Duyuru

Collapse
No announcement yet.

Stevia Şekeri, Stevia rebaudiana, Şeker Otu, Doğal Tatlandırıcı, LYME HASTALIĞI

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Stevia Şekeri, Stevia rebaudiana, Şeker Otu, Doğal Tatlandırıcı, LYME HASTALIĞI

    STEVİA İLE LYME TEDAVİSİ
    Stevia yaprağı özütü, yaygın olarak kullanılan bir şeker ikamesidir [ 39–41 , 57 ]; bununla birlikte, son araştırmalar, başlıca glikozitlerden biri olan steviosidin Bacillus cereus, Bacillus subtilis, Klebsiella pneumoniae ve Pseudomonas aeruginosa'ya karşı antimikrobiyal etkiye sahip olabileceğini göstermektedir [ 42 ]. Bu antimikrobiyal çalışmalarda yüksek konsantrasyonda saflaştırılmış stevioside kullanılmıştır ve çalışmamızda, daha düşük bir tam yaprak özü konsantrasyonu kullanarak Borrelia'ya karşı benzer antimikrobiyal etki elde ettik . Saflaştırılmış Stevioside içeren verilerimiz, Stevia'nın bütün yaprak özlerine kıyasla Borrelia spiroketleri ve kalıcıları üzerinde önemli bir antimikrobiyal etki göstermedi .(1) . Bu bulgu, Stevia tam yaprak özütü içindeki diğer bileşenlerin B. burgdorferi'ye karşı antimikrobiyal aktiviteye sahip olabileceğini ve gelecekteki çalışmalarda henüz tanımlanamayacağını göstermektedir. Bulgularımızla iyi bir uyum içinde, Stevia yaprağı ekstresi ayrıca E. coli, S. aureus, Vibrio mimicus, Salmonella typhimurium, S. mutans, Bacillus subtilis, Shigella dysenteriae ve Vibrio cholera gibi patojenlere karşı antimikrobiyal aktivite göstermiştir [ 38– 42 ]. Bir sonraki soru, Stevia'nın terapötik bir ajan olarak güvenle kullanılıp kullanılamayacağıdır. Toksikolojik çalışmalar, Stevia'nın mutajenik, teratojenik veya kanserojen etkileri olmadığını göstermiştir [ 57]] ve son çalışmalar, yüksek diyet alım seviyelerinde güvenliğini göstermiştir [ 57-59 ]. Stevioside ve Steviol'ün mutajenitesini inceleyen bir çalışmada, 10 mg/ml'deki Stevioside'ın S. typhimurium'da herhangi bir mutasyonu indüklemediği kaydedilmiştir [ 60 ]. Bu çalışmaların dışında Stevia'da bulunan glikoproteinlere dayalı iki önemli klinik çalışma bulunmaktadır. Hafif hipertansiyon yaşayan Çinli erkek ve kadınlar üzerinde yapılan randomize, çift kör bir çalışmada, glikoprotein steviosidin plaseboya kıyasla sistolik ve diyastolik kan basıncını düşürdüğü ve ayrıca herhangi bir yan etkiye neden olmadan yaşam kalitesini iyileştirdiği bildirilmiştir [ 44].]. Başka bir çalışmada, tip 2 diyabetli hastalarda steviosidin akut etkileri analiz edildi [ 45 ]. Kontrol grubuyla karşılaştırıldığında, steviosid, tip 2 diyabetik hastalarda tokluk kan şekeri düzeylerini düşürür [ 45 ]. Bu çalışmaların her ikisinde de, steviosid'in kapsüllenmiş toz formunun ve ağızdan alınan tam yaprak özütünün kullanıldığı kaydedildi [ 44 , 45 ]. Ayrıca klinik çalışmalardan birinde, %91 steviosid, %4 rebaudiosit A ​​ve %5 stevio tarafının diğer türevlerini içeren bir bütün yaprak preparasyonu kullanıldığı gözlemlenmiştir [ 45 ]. Bu klinik çalışmalardan elde edilen sonuçlar, hastaların steviosid kullanımından kaynaklanan herhangi bir yan etkiyle karşılaşmadığını göstermektedir [ 44 ,45 ]. Stevia'nın güvenliği geniş çapta çalışılmış olsa da, Stevia'nın herhangi bir bulaşıcı hastalık için bir antimikrobiyal ajan olarak kullanılabilmesi için daha fazla in vivo çalışma yapılması garanti edilmektedir.

    Gelecekteki hedefimiz, B. burgdorferi'ye karşı bütün yaprak Stevia ekstraktının bireysel bileşenlerini daha fazla araştırmak ve önemli antimikrobiyal etkisinden sorumlu en etkili bileşeni belirlemektir. Sonuç olarak, Stevia A özütünün B. burgdorferi'nin farklı morfolojik formları üzerindeki genel antimikrobiyal etkinliği , belirli antibiyotiklerin kombinasyonu ile karşılaştırılabilirdi. Bu ön çalışmanın sonuçları doğrudan klinik uygulamaya yansıtılamasa da, Stevia'nın güvenliliğini ele alabilecek ve Borrelia'ya karşı en etkili bileşen(ler)i daha fazla tanımlayabilecek daha ileri takip çalışmaları gereklidir .


    Git: Teşekkür

    Yazarlar, değerli girdileri ve makaleyi incelemesi için Arun Timmaraju MS'ye teşekkür eder. Bu çalışma, New Haven Üniversitesi, Joshua Araştırma Vakfı, Tom Crawford's Leadership Children Foundation, National Philanthropic Trust, Alyssa Wartman Funds to ES ve NH Charitable Foundation'dan PAST ve KMS'ye lisansüstü burslarla desteklenmiştir. Ayrıca Lymedisease'e teşekkür ederiz. org, Atomik Kuvvet ve Leica DM2500 mikroskoplarının yanı sıra Hamamatsu ORCA Dijital Kamera bağışı için Schwartz Araştırma Vakfı ve AFM'yi destekleyen bilgisayar için Global Lyme Alliance'a.

    https://www.ncbi.nlm.nih.gov/pmc/articles/PMC4681354/

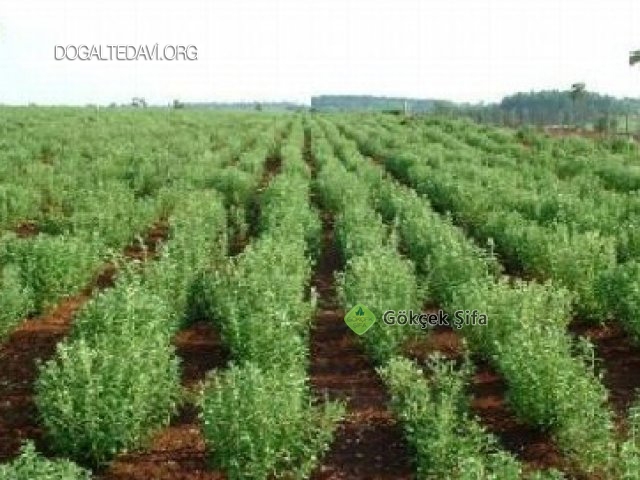
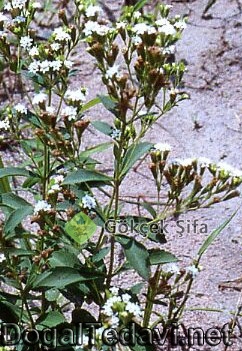
    Stevia, Paraguay ve Brezilya'da yetişen bir bitkidir. 1887 'de Paraguay yerlilerinin kullandığı şifalı bitkiler üzerinde inceleme yapan Güney Amerikalı bilim adamı Antonia Bertoni tarafından keşfedilmiştir. Paraguay kızılderilileri tarafından "Tatlı ot" ve "Ballı yaprak" ismiyle anılan ve tatlandırıcı olarak kullanılan stevianın sırrını çözmek için, 1931'de Bridel ve Lavieille adında iki Fransız kimyacı bitkinin yapraklarından elde ettikleri ekstre (öz) üzerinde çalışmaya başladı. Onların çalışmaları sonucunda beyaz kristal yapıda ve "Stevioside" adı verilen saf bir ürün elde edildi ve bu maddenin normal rafine şekerden 100 ile 300 kat daha tatlı olduğu fark edildi. 1971'de Çinli araştırmacı Dr.Tei-Fu-Chen Paraguay'ı ziyaretinde ilgisini çeken Stevia bitkisi üzerinde çalışmalar yaparak, kimyasal olmayan doğal yöntemlerle Stevia ekstresi (özü) elde edilmesinde ve yapraklarda bulunan keskin tadın kaldırılmasında başarılı oldu.

    Paraguay ve Brezilya'da yüzyıllardan beri tatlandırıcı ve tedavi edici özellikleri nedeniyle kullanılan stevia (şeker bitkisi) , Japonya'da da otuz yılı aşkın bir süredir milyonlarca kişi tarafından tatlandırıcı ve gıda katkısı olarak kullanılmaktadır. Bu bitkiden elde edilen özütün, kan şekerini düzenleyici etkileri olduğu kabul edilmektedir. Stevia'nın insülin duyarlılığını ve hatta salınımını arttırıcı etkilerinin olduğunu gösteren bazı araştırmaların varlığı diyabet tedavisinde kullanımını destekler niteliktedir.


    Diyet yapan,formuna dikkat eden,sağlıklı yaşamı tercih eden, çeşitli kronik hastalıklarından dolayı beslenme programına dikkat eden(Diyabet, Kalp hastalıkları, Obezite, Sindirim sistemi bozuklukları) kişiler güvenle kullanabilir.

    Sıcak – soğuk tüm içeceklerde Reçel,komposto, muhallebi vs gibi kaynatılarak pişirilen tüm yiyeceklerde direkt olarak katılarak, Pasta, kek, kurabiye, gibi fırında yüksek ısıda pişirilen tüm unlu gıdaların içerisine direkt olarak katılarak kullanılabilir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    <iframe width="640" height="390" src="https://www.youtube.com/embed/YacevQynsk0" frameborder="0" allowfullscreen></iframe>

    Şekere alternatif olan ilk bitkisel ürün Yaşam tarzlarımızın değişmesi, doğadan uzaklaşıp şehir hayatının içinde duvarlar arasına sıkışıp kalmak, çevre kirliliği, hormonlu gıdalar ve küresel ısınma derken gittikçe sağlıklı ve uzun bir yaşam sürme şansımızı kaybediyoruz. Ancak son zamanlarda organik gıda sektörünün genişlemesi, birkaç lüks markette satılırken artık sadece doğal ürünler satan pazarların kurulması bir nebze olsun rahat nefes almamıza ve kendimiz için bir şeyler yapabileceğimizin farkına varmamıza olanak sağlıyor. Artık sebzeden meyveye ve tahıllara kadar sofralarımızda yerini almaya başlayan doğal ürünlerin arasına bir yenisi daha eklendi.
    1900′lerin başında İngiliz ve Fransızlar tarafından şekere alternatif olarak incelenen ‘Stevia Rebaudiana’ bitkisi geçtiğimiz yüzyılın ortalarından itibaren Japonya’da yetiştirilmeye başlandı. Turşu, soya sosu, meyve suyu, sakız, dondurma ve çayın tatlandırılmasında kullanılan bu bitki artık Türkiye pazarına da girdi.
    LİF İHTİYACINI KARŞILIYOR‘Stevia Rebaudiana’ adlı bitkinin yapraklarından elde edilen doğal bir ürün olan Stevia Şekeri, doğa bilimci Antonio Bertoni tarafından 1887 yılında keşfedilmiş. Paraguay’daki Kızılderili kabileler tarafından uzun yıllar boyunca kullanılan bu bitkinin adı halk arasında ‘ballı yaprak’ ya da ‘şeker bitkisi’ olarak biliniyor.Stevia şekeri Paraguay, Brezilya, Japonya ve Çin’de sakızların ve konsantre ürünlerin içerisinde kullanılıyor. Anavatanı Güney Amerika olan Stevya ile ilgili bilgi veren Sanneosanitas Sağlık Endüstrileri A.Ş. Ürün Müdürü Onur Tarım, Stevya’nın özelliklerini şöyle anlatıyor: ‘Paraguay’da Kızılderililer bu bitkinin yaprağını çiğneyerek şeker ihtiyaçlarını karşılıyormuş. Hatta kadınlar belli bir dozajda doğum kontrol hapı olarak bile kullanmış. Ayrıca bu bitkinin adı Tarım Bakanlığı’nın pozitif bitkiler listesinde de yer alıyor. Bir ürün alırken mutlaka içindeki katkı maddelerine dikkat edilmesi gerekiyor. Stevia şekeri üç beyazdan kaçınmayı, diyet yapmayı ve sağlıklı yaşamayı hedefleyenler için oldukça ideal bir ürün. Gerçi yapay tatlandırıcılar da şeker yerine kullanılabiliyor. Ancak düşük kalorili kimyasal maddelerden oluşuyorlar. Stevia şekerinin nın bitkisel olması ise bu anlamda diğer tatlandırıcılardan ayrılmasını sağlıyor. Ağızda acı bir tat da bırakmıyor. Ayrıca ısıdan etkilenmiyor olması da büyük bir avantaj. Çünkü tüm içecekler, kompostolar, reçeller ve muhallebiler, pastalar, kekler ve kurabiyelerde bile şeker yerine kullanılabiliyor.’
    Ürünün içeriğinde bulunan Hindibağ kökü ekstresinin günlük lif ihtiyacını karşılamak açısından son derece önemli olduğuna da değinen Tarım, lif açısından eksik gıdalarla beslendiğimizde kabızlık gibi sindirim sistemi rahatsızlıklarının kaçınılmaz olduğunu belirtiyor. Hatta ürünün hafif hipertansiyonu olanlarda ve diyabet hastalarında düzenli kullanıldığı takdirde kan basıncında ve kan şekeri düzeyinde olumlu etkileri olduğu bile gözlemlenmiş.
    BİTKİNİN GÜCÜ

    ‘Stevia Rebaudiana’ Güney Amerika’da yetişen, yerli kabilelerinin kullandığı, çalıya benzeyen bir bitkinin yapraklarından elde ediliyor. Paraguay ve Brezilya’da yetişen ‘Chrysanthemum’ ailesinden küçük vahşi bir çalı türü.
    Paraguay, Brezilya, Kolombiya, Meksika, Peru’nun yanı sıra Japonya ve Güney Kore’de de yetiştiriliyor.
    Paraguay ve Brezilyada 40 yıldan bu yana şeker hastalarına verilen stevia (şeker bitkisi) kristalize edilmiş şeker ve suni tatlandırıcıların aksine, hazmedildiği esnada insülin salgılanmasına gerek duymuyor. Bu bitkiden elde edilen sıvı haldeki öz su, kan şekerini düzenleyici olarak kabul ediliyor.
    Stevia bitkisinin ihtiva ettiği steviosid maddesi, vücudumuzdaki tat duyuları tarafından normal şekerin 200-300 katı daha şekerli olarak algılanıyor. Bir tutam şeker bitkisi tozu, bir litre çay, kahve veya diğer içecekleri tatlandırmaya yetiyor.Kullanım alanları ise hayli zengin. Stevia diyette, şeker hastalığında, yüksek tansiyon problemlerinde kullanılabiliyor.
    Diş üzerinde plak oluşumunu yavaşlattığı ve çürük önleyici özelliği olduğu ise hayvanlar üzerinde yapılan deneylerle tespit edilmiş.


    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      <iframe width="640" height="390" src="https://www.youtube.com/embed/qYobk3TPq4s" frameborder="0" allowfullscreen></iframe>
      Stevia. Paraguay ve Brezilya'da yüzyıllardan beri tatlandırıcı ve tedavi edici özellikleri nedeniyle kullanılan stevia (şeker bitkisi, şekerotu) Japonya'da da otuz yılı aşkın bir süredir milyonlarca kişi tarafından tatlandırıcı ve gıda katkısı olarak kullanılmaktadır. Bu bitkiden elde edilen özütün, kan şekerini düzenleyici etkileri olduğu kabul edilmektedir. Stevia'nın insülin duyarlılığını ve hatta salınımını arttırıcı etkilerinin olduğunu gösteren bazı araştırmaların varlığı diyabet tedavisinde kullanımını destekler niteliktedir.
      Stevia bitkisinin ihtiva ettiği Steviosid maddesi, vücudumuzdaki tat duyuları tarafından normal şekerin 250-300 katı daha şekerli olarak algılanmaktadır. Bu nedenle bir tutam şeker bitkisi tozu, bir litre çay, kahve veya diğer içecekleri tatlandırmaya yeterli olmaktadır.
      Kullanım alanları
      Steviol aktif maddesi


      Diyet (kalori değeri sıfır (0)dır.), şeker hastalığı, yüksek tansiyon, kabızlık, depresyon ve asabiyete karşı olumlu etkileri vardır. Mide ve bağırsak florasını, asit alkali dengesini korur.Bununla birlikte stevia bitkisinin aşırı kullanımının özellikle erkeklerde sperm üretimini azaltarak kısırlığa neden olduğu hususunda çeşitli bilimsel araştırmalarda bulunmaktadır.[1][2][3]Amerika ve Kanada'da uzun süreler yasaklı durumda kalmıştır.Ancak bununla birlikte Japonya'da yıllarca bu bitki kullanılmış ve hiç bir yan etki kullananlar üzerinde görülmemiştir. Latin Amerika'da çeşitli ülkelerin halklarıda yüzyıllardır bu bitkiyi kullanmaktadır.En son olarak ABD ve Kanada bitki üzerinde yasakları kaldırıp, kullanımını serbest bırakmıştır. Bununla birlikte Paraguay'da özellikle kırsal kesimdeki ve yerli halk stevia bitkisini doğum kontrolü için kullanmakta olup [4] bu durumda bitkinin sperm azaltıcı etkisini doğrulamaktadır.Türkiye'de ilk kez 2009 yılında Antalya'da üretilmeye başlanmıştır.
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4

        Lyme hastalığı spiroketlerinin metamorfozları: Borrelia fenomeni devam ediyor

        Natalie Rudenko ,Maryna Golovchenko ,Katerina Kybicova ve Marie Vancova

        Öz
        Borrelia burgdorferi'den spiroketlerin hayatta kalması ( sensu lato) düşman bir ortamda kompleks, sıcaklık, tuzlar, besin içeriği, asitlik dalgalanması, çoklu konakçı veya vektöre bağlı faktörlerdeki değişikliklere yanıt olarak farklı gen ekspresyonunun düzenlenmesiyle elde edilir ve uykuda hücre alt popülasyonlarının oluşumuna yol açar. Diğer taraftan, antibiyotik basıncına yanıt olarak gen ekspresyon seviyesindeki değişiklikler, kalıcı bir alt popülasyonun oluşmasına yol açar. Her iki alt popülasyon da farklı fizyolojik durumlardaki hücreleri temsil eder. "Dormansi" ve "kalıcılık" bazı benzerlikleri paylaşır, örneğin her ikisi de replikasyon olmaksızın uzun süreler boyunca var olabilen düşük metabolik aktiviteye sahip hücreleri temsil eder, her ikisi de farklı gen ekspresyon profillerine sahip popülasyonlar oluşturur ve her ikisi de spiroketlerin replikasyon formlarından önemli ölçüde farklıdır. Persisters zor, düşük sayılarda, morfolojik olarak heterojen, çevre ile değişebilen çoklu ilaca toleranslı hücrelerde bulunur. "Persisterler" tanımı, başlangıçta kullanılan "hayatta kalanlar" teriminin yerini almıştır ve küçük bakteri popülasyonuna atıfta bulunmaktadır.Penisilin tarafından öldürülen Staphylococcus . Persistör fenomeni hemen hemen tüm bakteri türlerinde mevcuttur; ancak Borrelia'nın neden oluşmaya devam ettiğinin nedenleri tam olarak anlaşılamamıştır. Persisters, iyi bilinen biçimlerden değiştirilmiş morfolojilere değişen çeşitli boyut ve şekiller benimseyebilir. Borrelia'nın tepkisini önemli ölçüde değiştiren yuvarlak cisimler, L-biçimli bakteri, mikrokoloniler veya biyofilm benzeri agregalar oluşturabilirler.düşman ortamlara. Persistörler, agresif antibiyotik tehdidine rağmen canlı kalırlar ve uygun bir büyüme ortamında tersine çevrilebilir şekilde hareketli formlara dönüşebilirler. Persistörlerin biyofilmlerde önemli sayıda bulunması, antibiyotiklere biyofilm toleransının açıklanmasına yol açmıştır. Biyofilmlerin insan vücudundaki dirençli varlıkları sayesinde çok sayıda kronik hastalıkla ilişkili olduğu düşünüldüğünde, kalıcı hücrelere olan ilginin sonuç olarak hızlanması şaşırtıcı değildir. Patojenik bakterilerin neden olduğu bazı hastalıklar (örn. Tüberküloz, sifiliz veya cüzzam) doğası gereği genellikle kroniktir ve antibiyotik tedavisine rağmen sıklıkla tekrar eder. Otuz yıllık temel ve klinik araştırmalar henüz soruya kesin bir cevap vermedi:

        Anahtar Kelimeler: Borrelia burgdorferi , Persisters, Hareketsiz formlar, Yuvarlak cisimler, Biyofilm, Lyme hastalığı, Kalıcı enfeksiyon, Antibiyotik tedavisi
        Şuraya gidin:

        Arka fon
        Lyme hastalığı (LD), Borrelia burgdorferi ( sensu lato ) kompleksinden belirli spiroket türlerinin neden olduğu çok sistemli bir bozukluktur . Tüm Borrelia türleri, omurgalı bir konak ve kene vektörü arasında hareket eden konakçı tarafından üretilen bakteriler olduğundan, spiroketler bu çeşitli ortamları algılamak ve hayatta kalmak için stratejiler geliştirmişlerdir [ 1 - 4 ]. Hayatta kalma Sıcaklık, pH, tuz, besin içerik, birden fazla ev sahibi vektör bağımlı faktör [değişikliklere yanıt olarak gen ekspresyonu seviyesinin değiştirilmesiyle elde edilir 5 - 10]. Besinler, özellikle karbon kaynakları ve / veya bunların metabolik yan ürünleri, spirokete konakçılar ve vektörler arasında hareket ederken kılavuzluk eden düzenleyici ve kemotaktik sinyaller sağlıyor gibi görünmektedir. Antibiyotik tedavisine maruz kalan spiroketler, spiroket patojenitesinde yer alan genlerin farklı ekspresyonunun ve persister oluşum mekanizmasının düzenlenmesiyle hayatta kalabilirler [ 11 - 13 ]. Bununla birlikte, gen ekspresyon seviyesindeki değişiklik spiroket hayatta kalmanın tek yolu değildir. Borrelia'nın düşman ortamlardan aldığı sinyaller , patojeni canlı tutan ve yok edilmeye dirençli atipik formların veya persistörlerin üretimine neden olan morfolojik değişiklikleri çağrıştırır. İn vitro persister oluşumuve in vivo , düşmanca basınç düştüğünde hastalığın nüksetmesinin temelini oluşturan tersine çevrilebilir bir süreçtir [ 8 , 14 - 18 ].

        Spiroketlerin konakçı içinde başarılı bir şekilde kalıcılığı, konakçı dokuları üreme veya büyüme için kullanmak yerine hücre dışı matriks içinde spiroketlerin saklanması gibi konakçının bağışıklık sisteminden kaçılmasına bağlıdır [ 19 - 21 ]. Çoklu deneysel hayvan çalışmaları, Borrelia'nın C3H / HeJ, BALB / cByJ, C3H / HeNCrlBR, C3H- scid , SJL veya B6 Myd88 - / - genotiplerinin laboratuvar fareleri dahil olmak üzere çeşitli omurgalı konakçılarda sıklıkla kalıcı enfeksiyon oluşturduğunu göstermiştir [ 17 , 22 - 28 ], beyaz ayaklı fareler Peromyscus leucopus [ 29 , 30 ], sıçanlar [ 31 ], hamsterler [32 , 33 ], kobaylar [ 34 , 35 ], gerbil [ 36 ], köpekler [ 37 - 39 ], atlar [ 40 - 42 ] ve insan olmayan primatlar [ 43 - 49 ]. Klinik kanıtlar bu paradigmayı antibiyotik tedavisi görenler de dahil olmak üzere insanlara genişletmektedir [ 50 - 85 ].

        Konakçıların LD spirokete karşı immün yanıtları, hayvanlarda ve insanlarda antibiyotik tedavisinin farmakokinetik ve farmakodinamik parametreleri, enfeksiyöz doz ve enfeksiyon yolu aynı değildir [ 86 ]. Laboratuvar hayvan modellerinde elde edilen sonuçların basitçe insan LD'deki persistör fenomenini açıklamak için uygulanamayacağı açıktır. Bununla birlikte, LD spiroketinin hayatta kalma rekabetinde kullandığı çeşitli stratejilerin genişletilmiş örnekleri, yani aktif immün baskılama, immün toleransın indüksiyonu, faz ve antijenik varyasyon, hücre içi izolasyon veya immün ayrıcalıklı bölgelere saldırı, spiroketlerin omurgalı konakçılarda kalması [ 4 , 87 ].

        Antibiyotik sorunuyla yüzleşmek
        Antibiyotik tedavisine yanıt vermede sık karşılaşılan başarısızlıklar, son zamanlarda ciddi bir halk sağlığı sorunu haline geldi. Bu tür vakaların ortak açıklaması, bakteri direncinin gelişmesi sonucu bir süperinfeksiyonun ortaya çıkmasıdır. Bakteriler, klinik olarak kullanılan antibiyotiklerin çoğuna direnç geliştirebilirler ve çoklu ilaca dirençli patojenlerin uzun süreli ortaya çıkışı, genel nüfus tarafından günlük yaşamda, hastanelerde, tarımda veya çiftçilikte antibiyotiklerin geniş kullanımıyla güvence altına alınır. Hiç şüphe yok ki, antibiyotik tedavisindeki başarısızlıkların ana sorumlusu dirençtir; ancak, daha az belirgin nedenler de dikkate alınmalıdır. Bu nedenlerden biri, bakterilerin fizyolojik durumunu değiştirerek antibiyotiklerin öldürme etkisinden kurtulması durumunda bakteriyel kalıcılık olarak bilinen bir fenomendir.

        Lyme hastalığı, genellikle başarılı bir sipiril [replikatif formu hedef enfeksiyonun erken evrelerinde antibiyotik tedavisi ile tedavi edilebilir bulaşıcı bir hastalıktır 88 - 90 ]. Genel olarak mikrobiyal popülasyonların ve özellikle B. burgdorferi'nin ( sl ) antibiyotik tedavisi, bifazik öldürmeye [ 16 , 18 ], büyüyen bakterileri ortadan kaldırmaya ve çok ilaca toleranslı hücrelerin bir alt popülasyonunun ortaya çıkmasına neden olur, persisters [ 91 , 92 ]. Antibiyotik konsantrasyonu belirli bir eşiği aştığında, yalnızca persister hücreler hayatta kalır [ 18]. Persistörler, genetik modifikasyon yoluyla kendilerine direnç kazanmadan antibiyotiklere toleranslıdır [ 93 ]. Kalıcılık, miras alınamayan bir özelliktir. Bu, kalıcı hücreleri, kararlı, kalıtsal ilaç duyarsızlığı sergileyen dirençli mutantlardan ayırır [ 94 ]. Antibiyotik basıncındaki bir azalma, orijinal popülasyon kadar antibiyotiklere duyarlı bir hücre popülasyonunun yükselmesine yol açar. “Geri dönenler” olarak adlandırılan yüksek hücre popülasyonu, kopyalanan formlara geri dönebilen ve relaps veya kronik enfeksiyona neden olabilen çok küçük bir persistans oranı oluşturur [ 18 , 95 ].

        Düşmanca meydan okumaya yanıt olarak ısrar, Borrelia'nın hem vektör kenelerindeki hem de rezervuar konakçılarındaki karmaşık yaşam döngüsü için temel bir stratejidir ve muhtemelen normal omurgalı konakçıların yanı sıra insanlar gibi tesadüfi olanlar için de geçerlidir. LD spiroketlerinin antibiyotik tedavisine yanıt olarak persistere dönüşme yeteneği, in vitro olarak replikatif Borrelia'nın ortadan kaldırılmasında etkili olan kronik enfeksiyonun antibiyotiklerle tedaviye şaşırtıcı direncini açıklamaktadır [ 18 ].

        Farklı stresörler: çeşitli pleomorfik formlar
        B. burgdorferi ( sl ) spiroketlerinin iyi bilinen düz dalga formlarına ek olarak, ilmekli veya halka şekilli formlar, kabarcıklar, yuvarlak cisimler (RB) ve hücre duvarı eksik formları, spiroket gibi hareketsiz atipik morfolojilerin varlığı koloniler veya biyofilm kümeleri tanımlanmıştır [ 14 , 95 - 105 ]. "Yuvarlak cisimler" in genelleştirilmiş tanımı ayrıca kokoid, küresel veya küresel cisimleri, granülleri, kistleri, sferoplastları veya vezikülleri içerir; bunların tümü, oluşumu düşman çevre koşulları tarafından indüklenen canlı üreme propagülleridir [ 106 ]. Hareketli B. burgdorferi'nin morfolojik değişiklikleri ( sl) su veya serum açlığı ile inkübasyona, ortam bileşimi değişikliğine, gaz bileşimine, oksidatif strese, pH veya sıcaklık dalgalanmasına, ortam asitliği-alkalinite dalgalanmasına, tuz konsantrasyonlarına, şekerlere veya diğer organik bileşiklere yanıt olarak spiroketler in vitro olarak gözlenir veya antibiyotik tedavisine yanıt olarak [ 7 , 14 , 100 , 104 - 108 ]. Kültürde RB'lerin oluşumu yaşlanmayla indüklenir ve RB'lerin ortaya çıkışı hareketli spiroketlerin kaybolması ile ilişkilidir [ 106 , 108]. Yanlışlıkla, hareketli formun bir RB'ye dönüşümü, patojen canlılığının azalması olarak kabul edildi. Bununla birlikte, RB'ler bir log faz kültüründe spiroketlere göre daha az hareketli olsalar da, uygun koşullar altında yana doğru seğirebilir veya hareket edebilir ve aktif büyüyen üreme dalgası şeklindeki spiroketlere geri dönebilirler [ 7 , 14 , 15 , 100 , 101 , 103 - 107 , 109 ]. B. burgdorferi ( sl ) kompleksinden spiroketlere ek olarak, Spirochaeta [ 110 -113 ] ve keşfedilmesi ile güçlendirilmiştir Spirochaeta coccoides , cinsinin yeni bir üye Spirochaeta büyür ve RB formlarda yeniden üretmektedir yalnızca [ 111 ]. LD tedavisi için yaygın olarak önerilen β-laktam antibiyotiklere maruziyete yanıt olarak in vitro RB'lerin oluşumu 20 yıldan daha uzun bir süre önce tanımlanmıştır [ 105 ]. Borrelia'nın antibiyotik tedavisinden sonra konakçılarda kalıcılığı zaten doğrulanmıştır [ 17 , 32 , 48 , 49 , 85 ]. Kronik Lyme nöroborelyozlu bir hastanın serebral korteksinde de atipik kistik formlar gözlendi [101 ]. Kene ısırığından sonra nadir fakat tipik lenfositomalar geliştiren hastalardan izole edilen cilt biyopsilerinde Borrelia agregatları veya biyofilmleri tespit edilmiştir [ 114 , 115 ]. Kendi kendine üretilen bir polisakkarit matrisine gömülü bakterilerden oluşan biyofilmlerin, antibiyotik tedavisine toleransları ve konakçı serum komplemanına dirençleri nedeniyle kronik enfeksiyonlara neden olduğu bilinmektedir [ 94 , 96 , 106 , 114 , 116 ].

        Persistörlerin antibiyotiklere farklı duyarlılıkları
        Persistler oldukça heterojendir [ 8 , 96 - 101 , 104 , 106 , 114 ]. Stres persistörleri , dönüşümlerini tetikleyen koşulun kökeninden dolayı aynı Borrelia türlerinin antibiyotik persistörlerinden farklıdır . In vitro persistörler, spiroketlerin bulunduğu ortamdaki farklılık nedeniyle in vivo persistörlerden farklılık gösterir [ 95 ]. Aynı morfolojik formların, örneğin antibiyotik maruziyetine yanıt olarak oluşan RB'lerin, sabit büyüme kültüründe fazla bulunan RB'ler ile aynı olup olmadığı hala bilinmemektedir [ 109]. Son çalışmalar, heterojen persisterlerin farklı bir antibiyotik spektrumuna duyarlılığının da farklı olduğunu doğruladı [ 102 , 117 ]. Borrelia'nın üç morfolojik formunun in vitro çalışmasının sonuçları, LD vakalarında monoterapi olarak yaygın olarak kullanılan beş antimikrobiyal ilacın (doksisiklin, amoksisilin, tigesiklin, metronidazol ve tinidazol) spiroketlerin, yuvarlak cisimlerin ve biyofilm benzeri kolonilerin ortadan kaldırılmasında farklı potansiyel gösterdiğini ortaya koymuştur [ 102]. Spiroketlerin (% 85-90) ve yuvarlak cisimlerin (% 68-90) kopyalanması durumunda beş ilacın tümü tarafından önemli öldürme gösterilmiş olsa da, çalışılan ilaçlardan hiçbiri spiroket koloni oluşumunu% 55'ten fazla azaltamadı. Aynı çalışmada, biyofilm benzeri kolonilerin% 70-85'inde canlı spiroketler tespit edilmiştir [ 102 ]. Başka bir çalışma [ 117 ], antibiyotiklere toleransın kültür yaşlandıkça, log fazından durağan faza, spiroket formundan RB'ye, mikro kolonilere veya biyofilmlere kadar farklı spiroket formları tarafından arttığını ortaya koymuştur. Aynı çalışma, birden fazla ilacın (üçlü kombinasyon) kullanımının spiroket sebatlarını ortadan kaldırmada çok daha etkili olduğunu doğruladı. Biyofilm benzeri spiroket mikro kolonilerinin in vitro olarak tamamen ortadan kaldırılmasıdaptomisin + doksisiklin + sefoperazon kombinasyonu için doğrulandı, bu daha önce herhangi bir tekli, ikili ve hatta üçlü ilaç kombinasyonuyla elde edilemeyen bir şeydi [ 117 ]. Borrelia persistörlerinin in vitro başarılı bir şekilde ortadan kaldırılması için bir başka seçenek de antibiyotiklerin puls dozajıdır [ 18 ]. Bahsedilen çalışmada analiz edilen farklı sınıflardan çok sayıda antibiyotik kombinasyonu persisterlerin öldürülmesini iyileştirmezken, dört puls doz setakson, persisterler dahil olmak üzere kültürdeki tüm canlı spiroketleri ortadan kaldırdı [ 18 ].

        LD'nin antibiyotik tedavisi, bazen beklenmedik sonuçlarla birlikte gerçek bir zorluktur ve LD portföyündeki başka bir paradokstur. Görünüşte mantıksız olmasına rağmen, erken LD'yi iyileştirmek için kullanılan çoklu ön antibiyotikler, tedavide kullanılandan çok daha düşük konsantrasyonlarda Borrelia'nın spiral formunun kalıcı formların çeşitlerine dönüşmesini tetikliyor [ 12 , 106 ]. Sonuç olarak Borrelia popülasyonu, morfolojik dönüşümü tetikleyen antibiyotiklere toleranslı hale gelir. Bu paradoksun güzel bir örneği, yüksek konsantrasyonlarda Borrelia'nın % 98'ini ortadan kaldırabilen doksisiklin ve amoksisilindir.ancak kalıcı formlar açısından zengin olan sabit bir faz kültürüne karşı zayıf aktivite gösterirler. Her iki ilaç da kültürde oluşumunu indükledikleri RB'lere karşı etkisizdir [ 12 , 102 , 105 , 106 , 108 ]. Morfolojik olarak değiştirilmiş formların, in vitro kültür tedavisi için kullanılan spesifik antibiyotik, doksisiklin veya amoksisilin için karakteristik olan farklı gen ekspresyon profillerine sahip spiroket popülasyonlarını temsil ettiğinin not edilmesi ilginçtir . B. burgdorferi'nin tedavisinin50 μg / ml doksisiklin veya 50 μg / ml amoksisilin ile altı günlük B31 kültürü, doksisikline toleranslı popülasyonda 675 genin (340 aşağı regüle ve 335 upregüle) ve amoksisiline toleranslı popülasyonda (174 aşağı regüle ve 342 yukarı regüle) [ 12]. 30S ribozomal alt birimine bağlanan doksisiklin, hücre zarfı bozukluğuna neden olan protein sentezini engeller. Amoksisilin, bakterilerin ölümüyle sonuçlanan bakteri hücre duvarlarının sentezini engeller. Doksisiklin ve amoksisilin ile indüklenen RB'lerin yollarının karşılaştırılması, bunların, dış membran lipoprotein gen ekspresyonunun aşağı regüle edilmesiyle antibiyotik basıncı altında spiroket sağkalımının sağlanmasına muhtemelen katkıda bulunan bazı ortak özellikleri paylaştıklarını göstermektedir. Spiroketlerin antibiyotik tedavisinden kurtulmak için kullandıkları stratejilerden biri, ilaç hedeflerinin azaltılması olabilir [ 12 ].

        Amoksisilin ile indüklenen RB'ler, in vitro persisterlere karşı aktif ilaçların taranmasında B. burgdorferi'nin sabit faz kültürüne alternatif bir model olarak kullanılmıştır . Her iki model de aynı test edilen ilaçlara karşı farklı duyarlılıklar gösterdi. Sabit faz kültürünün yapısı, RB'ler, mikro koloniler ve biyofilm benzeri agregalarla zenginleştirildiği için daha karmaşık olduğundan, test edilen antibiyotiklere toleransının amoksisiline bağlı yuvarlak cisimlere kıyasla daha yüksek olduğu gösterilmiştir [ 109 ].

        Kalıcılıkta rol oynayan genetik faktörler
        Genetik olarak homojen bir spiroket popülasyonu, değişen çevresel koşullara yanıt olarak gen ekspresyonunu dinamik olarak değiştirebilir. Bir bakteri alt popülasyonundaki harici uyaranlar, bir uyku hali durumuna neden olan genlerin ekspresyonunu rastgele tetiklediğinde, kalıcı bir alt popülasyon ortaya çıkabilir. Kalıcılık, yalnızca düşmanca baskıya maruz kalan ve iki fenotip, yani duyarlı ve kalıcı arasında geçiş ile karakterize edilen bir Borrelia hücreleri alt popülasyonunda meydana gelir . Borrelia burgdorferi'nin tetrasiklin antibiyotiklerle tedavi edildiğinde devam ettiği gösterilmiştir [ 49 ]. Borrelia için ısrar mekanizması olsa bileHenüz tarif edilmemiştir, mantarlarda, parazitlerde veya virüslerde, bir dizi tanımlanmış yollara ve genlere sahip bakteri üremeleri üzerine yapılan çalışmalar, kalıcı oluşum ve hayatta kalma mekanizmasına ışık tutmuştur. Bakteriyel persistörlerde tanımlanan yollar, yeni anti-persister ilaçların geliştirilmesi için potansiyel hedefler olarak hizmet edebilir. Bunlar arasında örneğin toksin-antitoksin modülleri ( hipBA , relBE , mazEF , tisAB , mqsR , hhA , hokA , cspD , pasT ), sıkı yanıt ( relA , dksA ), DNA onarımı veya koruması ( lexA , recA, recB , xerC , xerD , dps ), fosfat metabolizması ( phoU ), alternatif enerji üretimi ( sucB , ubiF , glpD , plsB , tgs1 ), anti-oksidatif stres veya makromolekül bozulması (süperoksit dismutaz, katalaz) veya sinyal yolları ( comE / comC; tnaA , oxyR , flu , pspBC ) (inceleme için [ 95 ] e bakınız ). Olarak in vitro persisters farklılık vivo , persisters öldürmek için bir ilaç in vitropersisters'ın bunu in vivo yapması garanti edilmez . Bununla birlikte, in vitro persisterler, in vivo persisterlerle bazı ortak özellikleri paylaşabilir ve in vitro persister modeller, in vivo persisterlerin vekilleri olarak persister çalışmalarda yine de önemli değere sahip olmalıdır . Farklı persisterler arasındaki olası örtüşme, düşmanca baskıya yanıt olarak bir hayatta kalma stratejisi olarak patojen tarafından farklı şekilde düzenlenen genlerin ekspresyon modelini belirlemek için tek hücreli teknikler veya RNA sekanslama analizi kullanılarak incelenebilir.

        Biyofilmler
        Genel olarak, biyofilm oluşumu, başlıca dört nedenden dolayı ortaya çıkan, değişen bir ortama bakteriyel adaptasyonun bir örneğidir: (i) savunma; (ii) kolonizasyon; (iii) topluluk; ve (iv) bakteriyel büyümenin varsayılan modu [ 118 ]. Özellikle biyofilm oluşumu, mikrobiyal gelişimin bir aşamasıdır ve kronik bakteriyel enfeksiyon oluşum mekanizmasının bir parçasıdır [ 119 - 121]. Hücre yüzeyinden uzanan ve tek tek hücrelerin veya bir bakteri kolonisinin etrafında "glikokaliks" oluşturan karışık polisakkarit liflerinin ilk sözünden itibaren 40 yıldan fazla bir süre geçti. Glikokaliks aracılı yapışma, diş çürüklerinden pnömoniye kadar geniş yelpazedeki bakteriyel hastalıkların başlaması ve ilerlemesinde ana belirleyici olarak tanımlanmıştır [ 122 ]. Yeni açıklama, biyofilmleri, bir alt tabakaya, arayüze veya birbirine geri çevrilemez şekilde bağlanmış, kendileri tarafından salgılanan hücre dışı polimerik maddeler (EPS) matrisine gömülü ve değişmiş bir büyüme fenotipi ve gen transkripsiyonu sergileyen, mikrobiyal türetilmiş bir hücre topluluğu olarak tanımlar. [ 119]. Biyofilmler, çevresel ve terapötik basınca oldukça dirençli, karmaşık yapılardır. Hücre dışı polimerik maddenin birincil polimerik bileşiği, Spirochaetales , Leptospira biflexa ve Treponema denticola [ 123 , 124 ] ve Borrelia burgdorferi [ 96 ] dahil olmak üzere birçok bakteri türü için önemli bir biyofilm bileşeni olarak tanımlanan sülfatlanmamış bir mukopolisakkarit olan aljinattır. . Olgun biyofilmlerin kimyasal yapısı çeşitli olmasına ve fosfolipitleri, polisakkaritleri, proteinleri, glikoproteinleri, gömülü kalsiyum ve hücre dışı DNA'yı (eDNA) içermesine rağmen, aljinin, kalsiyum ve eDNA, biyofilmlerin tipik bir belirteci olarak kabul edilir [ 96]. Biyofilm oluşumu (neden genleri) için gerekli olan ve birden fazla bakteri türünde yerleşik bir biyofilmde (etki genleri) farklı şekilde ifade edilenler, K. Jefferson tarafından yürütülen genlerin derlemesi, yapışma, çekirdek algılama, hücre duvar sentezi, metabolizma, stres yanıt bölümü ve motilite [ 118 ]. Biyofilmler, tek bir bakteri türü tarafından oluşturulabilir veya biyotik veya abiyotik yüzeylere bağlı çok türlü bir topluluğu temsil edebilir [ 121 ]. Yüzeylerin fiziksel özellikleri, bakteriyel yapışmayı yalnızca küçük bir ölçüde etkiler ve pürüzsüz yüzeylerin, pürüzlü yüzeylerle aynı başarı ile kolonize edildiğini gösterir [ 125]. Bakteriler yüzeye bağlandıktan sonra yüzeydeki yaşama uyum sağlamak için gerekli olan bir dizi değişiklikten geçer. EPS'nin kapsamlı üretimi, yaygın bir adaptasyon adımıdır; biyofilmleri korur ve biyosit direnci ile sonuçlanabilir [ 126 , 127 ]. Çevresel koşullardaki değişiklikler, serbest yaşayan bakterilerin hücre-yüzey ve hücre-hücre etkileşimlerini içeren erken aşamalarla başlayan bir yüzeyde yaşama geçişini tetikler, ardından olgun biyofilmlerin gelişmesi ve planktonik bir moda geri dönüşü izler. büyüme. Bu çevresel sinyaller, bakteri türleri arasında farklılık gösterebilir ve farklılık gösterebilir, ancak genel olarak biyofilm oluşumunu etkileyebilecek şey ortam bileşimi / beslenme, sıcaklık, pH, ozmolarite, demir veya oksijendir [ 121]. Yüzeye yapışan bakteriler sıklıkla EPS sentezinin artmasıyla ve olgun biyofilmleri ciddi bir klinik problem haline getiren antibiyotik direncinin gelişmesiyle ilişkilendirilir. EPS'nin, antibiyotik penetrasyonuna fiziksel veya kimyasal difüzyon engelleri, biyofilmlerin yavaş büyümesi, stres tepkisinin aktivasyonu veya biyofilm spesifik bir fenotipin ortaya çıkması gibi farklı mekanizmalar kullanarak antibiyotiklerin biyofilmdeki bakteriyel hücrelere erişimini engellediği bilinmektedir [ 128 ].

        Lyme hastalığına neden olan ajanın biyofilm oluşum modu, diğer bakterilerinkine oldukça benzerdir [ 129 ]. Borrelia'nın koloniler oluşturabildiği ve statik veya düşük paylaşım gücü olan bir ortamda biyotik ve abiyotik substratlar üzerinde biyofilmlerin karakteristik özelliklerine sahip agregatlar geliştirebildiği gösterilmiştir . Atomik kuvvet mikroskobunun kullanılması, Borrelia biyofilmlerinde daha önce diğer biyofilmlerde tanımlanan ve muhtemelen oksijen ve beslenmenin dağıtım yolları olarak hizmet eden kanal benzeri yapıların varlığını ortaya çıkarmıştır [ 119 , 130 ]. Sapi vd. [ 96 ], Borrelia'nın koruyucu hücre dışı substratınınagregalar ağırlıklı olarak kalsiyum ve hücre dışı DNA içeren aljinattan oluşur. Bununla birlikte, kümelenmiş algA , algD ve algE genleri tarafından düzenlenen [ 131 ], alginin üretimi için aynı yolu paylaşan diğer bakteri türlerinin aksine , Borrelia , genomunda buna homolog genlerden yoksun olduğundan, muhtemelen henüz bilinmeyen bir aljinat üretim yolu kullanmaktadır. yukarıda bahsedilen. Borrelia biyofilm oluşumunun temel bileşenlerinin analizi , çevresel streslere bakteriyel yanıtta yer alan ve çevresel uyaranları algılamaktan sorumlu olan RpoN-RpoS alternatif sigma faktör yollarının etkisini vurgulamıştır [ 132]. RpoN-RpoS sinyal transdüksiyon yolu, spiroketin keneden konağa başarılı bir şekilde iletilmesini sağlar ve Borrelia'nın bulaşıcı döngüsü, hayatta kalma ve stres tepkisine dahil olan 100'den fazla genin ekspresyonunu düzenler [ 133 , 134 ]. Borrelia biyofilm oluşumu için hayati önem taşıyan diğer bir düzenleyici yol , otoindükleyiciler tarafından biyofilm oluşumunda rol oynayan genlerin popülasyon çapında farklı düzenlenmesini tetikleyen yetersayı algılama sistemidir [ 135 - 137 ].

        Borrelia biyofilmleri, kanla besleme sırasında enfekte kene nimflerinin orta bağırsağında zaten tanımlanmıştır [ 5 ]. Yazarlar, konfokal ve epifloresans mikroskobu kullanarak, kanla beslenen Borrelia spiroketlerinin, hareketli olmayan organizmaların epitel hücre ile ilişkili ağları olarak nimf orta bağırsak boyunca ilerlediğini doğruladılar . Borrelia biyofilmleri, enfekte insan derisinde de tespit edilmiştir [ 114 ]. Hastalığın tekrar ortaya çıkması, spiroketlerin konakçı bağışıklık sisteminden kaçma yeteneği ve antibiyotik tedavisine direnme yeteneği, enfekte hastalarda biyofilm benzeri koruyucu yapıların varlığını güçlü bir şekilde desteklemektedir.

        Sonuçlar
        Enfeksiyonun erken evrelerinde LD tedavisi için önerilen antibiyotiklerin listesi genişlemektedir [ 12 , 95 , 96 , 102 , 108 , 109 , 114 ]. Mevcut antibiyotikler, spiroketlerin büyüyen replikatif formunu öldürmede etkilidir, ancak büyümeyen kalıcı formlara karşı oldukça yetersiz aktiviteye sahiptirler. Borrelia enfeksiyonunun β-laktam, tetrasiklin, florokinolon, sülfonamid, makrolid, lipopeptid, glikopeptidler, aminoglikozit veya antitümör antibiyotiklerle monoterapisinin yeterli olmadığı doğrulanmıştır . Bu tür bir tedavi, in vitro spiroketlerin ortadan kaldırılmasında başarısız olur.kültür ve insanlar dahil tedavi edilen omurgalılarda canlı ve etkili persistanlar bırakır [ 12 , 17 , 18 , 49 , 85 , 106 , 108 , 109 , 117 ]. Güçlü anti-persister aktiviteye sahip antibiyotiklerdeki bariz ihtiyaç, mevcut LD antibiyotiklerden farklı etki gösteren ilaçların tanımlanmasına yol açmıştır [ 117]. Bununla birlikte, daptomisin, klofazimin veya daunomisin gibi anti-persister ilaçlar bile kistler, yuvarlak cisimler, mikro koloniler veya biyofilmler gibi farklı kalıcı formları tek başına öldüremez. Sülfa ilaçlarının kullanımıyla birlikte farklı etki mekanizmalarına sahip farklı antibiyotik sınıflarından iki veya üç ilacın kombinasyonu, in vitro olarak birden fazla persister formunun ortadan kaldırılmasında önemli iyileşme gösterir.. Nabız dozlama tedavisi persistörleri ortadan kaldırmak için büyük bir potansiyel gösterir ve LD tedavisi için umut verici bir şema gibi görünmektedir. Çoklu kalıcı formlara karşı yüksek aktiviteye sahip alternatif ilaç adaylarının belirlenmesine olan ilgi artmaktadır. Üçlü kombinasyon antibiyotik tedavisine olan gücü ile karşılaştırılabilen ve günlük faz spiroketlerini ortadan kaldırmanın yanı sıra persistörleri azaltmada (% 94 oranında) etkili olan diğer bilinen "ajan", yaygın olarak bal yaprağı veya tatlı yaprak olarak bilinen bitki olan Stevia rebaudiana'dır [ 138]. Bitkinin tüm yaprak özütü olan bu “ajan” ın öldürme gücü büyük ihtimalle henüz tanımlanmamış birden çok doğal bileşiğin sinerjisinin sonucudur. Son zamanlarda, uçucu yağların geniş bir setinin taranması, bazı anti-persister ilaçlar için tarif edilenden daha güçlü bir anti-persister aktiviteye sahip adayları ortaya çıkardı. Örneğin, kekik yağı ve aktif bileşeni karvakrol, tarçın kabuğu veya karanfil tomurcuğu, 40 uM daptomisine kıyasla Lyme hastalığı spiroketinin sabit fazına ve biyofilmlerine karşı daha etkiliydi. Karşılaştırma için, tarçın kabuğu uçucu yağının aktif bileşeni olan% 0.05 sinnamaldehit, LD spiroketi sabit fazda sterilize etti ve sarımsak uçucu yağı, Borrelia'nın tüm formlarının öldürülmesinde başarılı oldu.% 0.05'lik bir konsantrasyonda. Bu sonuçlar, 21 günlük alt kültürden sonra bakteriyel yeniden çoğalmanın olmaması ile doğrulanmıştır ve 5 µg / ml üçlü ilaç daptomisin + doksisiklin + sefuroksim ile kültür tedavisi ile elde edilen sonuçlara karşılık gelmektedir [ 139 , 140 ]. Umut verici veya oldukça başarılı anti- Borrelia ilaçları veya bunların kombinasyonlarıyla ilgili yayınlanan sonuçların çoğu in vitro olarak elde edildi . İn vivo spiroketler üzerindeki etkilerinin farklı olacağına, beklenmedik olabileceğine ve kesinlikle tahmin edilemeyeceğine şüphe yoktur . Anti- Borrelia'nın eleme kabiliyetinin değerlendirilmesiilaçlar veya LD spiroketlerinin çoğalmayan çoklu formlarına karşı alternatif adaylar bulmak başka bir düzeye taşınmalıdır. Birden fazla laboratuar hayvanı modelini içeren aynı deneyler in vivo yapılıncaya kadar, başarılı LD tedavi protokolü hakkındaki endişeler tartışma veya spekülasyon düzeyinde kalacaktır. LD tedavisinin başarısı, antibiyotik tedavisinin ne kadar erken başladığına bağlıdır. Soru, eğer 7-10 günlük bir in vitro kültür zaten patojenin birden fazla kalıcı formunu içeriyorsa , enfekte olmuş bir konakta spiroketlerin replike edici formlarının ortadan kaldırılmasını sağlamak için antibiyotik tedavisine başlamak için ne kadar erken başlayacağıdır [ 109]. Lyme hastalığının belirleyici belirteci eritema migrans, bir kişide kene ısırığından sonra gelişmezse, antibiyotik tedavisi hemen başlatılmayacaktır. İn vitro dostça olmayan bir ortam tarafından tetiklenen bu tür değişiklikler dakikalar veya saatler içinde meydana gelebildiğinde, hareketli bakterilerin morfolojisini değiştirmesi veya in vivo omurgalı konak dokularında saklanması için ne kadar zamana ihtiyaç duyabilir ? Bir keneye maruz kaldıktan kısa bir süre sonra antibiyotik monoterapisi başlatılsa bile, LD tedavi paradoksu yine de ortaya çıkabilir: ön saftaki LD antibiyotikler, birçok hayvan türünde kronik enfeksiyonun doğrulanmasıyla kanıtlandığı için in vivo kalıcı bir alt popülasyonun oluşumunu tetikleyebilir ve insanlar [ 23 , 48 ,49 , 85 , 106 , 114 ]. Atipik hareketsiz spiroket formları, persisterler, antibiyotik tedavisine bakılmaksızın Borrelia ile enfekte olmuş bir konakçıda yıllarca hayatta kalır . LD'nin nüksü büyük olasılıkla, persistörlerin uygun büyüme koşulları altında hareketli replike edici enfektif formlara dönüşebilmesinden kaynaklanmaktadır. LD'nin tedavisi, tarihçesi ve doğal ortamında Borrelia pleomorfizmi hakkında bilgi sahibi olmayı gerektirir [ 106 ]. İnsanlarda kronik spiroket enfeksiyonlarının, zamanla konakçı ve patojen arasında gelişen ortakyaşam örnekleri olduğu teorisi, LD için önerilmiştir [ 106 ]. İnsan - Borreliaetkileşim, genetik, metabolik ve davranışsal seviyelerde yüksek oranda entegre olan birlikte evrimleşmiş spiroket-kene-konakçı ilişkilerini temsil eder. Bu bakış açısına göre LD, uzun süreli genetik olarak entegre ortakyaşamların bir tezahürüdür ve hastalık semptomları, konakçı bağışıklık sisteminin birçok yönünün yanıt verdiği simbiyojenezin ifadesidir [ 106]. Sembiyogenez, hayatta kalmalarını artırmak için türler arasında işbirliği anlamına gelir. Spiroket için simbiyozun yararı açık olsa da, bu ortakyaşamın konakçıya faydası nedir? Spiroketlerin konakçıdaki başarılı kalıcılığının, tamamlayıcısı tarafından tanınmasını ve yok edilmesini önlemek için konak düzenleyici proteinleri kullanma yeteneklerine bağlı olduğu bilinmektedir. Kronik LD'yi antik birlikte evrimleşmiş konakçı-patojen ortakyaşamlar olarak anlayamamak, yanlış tanılara ve yetersiz tedavilere yol açabilir. Kronik LD'nin devam eden bir enfeksiyondan kaynaklanma olasılığı gerçektir. Kronik LD'nin nedeni ne olursa olsun, yani biyofilmlerde gizlenmiş kalıcı formlar [ 49 , 96 ], hücre duvarı eksik formları [ 31 ] veya yuvarlak cisimler [ 15], hepsi için in vivo tedavi seçenekleri çok sınırlıdır. Bu sorunu ele almak, kronik Lyme hastalığı adı verilen karmaşık ve tartışmalı konunun yeni ve kapsamlı bir incelemesini gerektirir.

        Teşekkürler
        Makalemizde adı geçen ve çalışmaları bu tartışmayı teşvik eden tüm araştırma gruplarına ve yazarlara minnettarız. Yararlı yorumları ve yazı dili düzeltmesindeki yardımı için Marcia E. Herman-Giddens'e minnettarız.

        Kısaltmalar
        LD Lyme hastalıkları
        RB yuvarlak cisimler
        EPS hücre dışı polimerik maddeler
        eDNA hücre dışı DNA
        Şuraya gidin: Yazar katkıları


        NR ve MG, makalenin konseptini geliştirdi ve incelemenin taslak bir versiyonunu yazdı. NR, MG, KK ve MV, makalenin yazımına, düzenlenmesine ve revizyonuna katkıda bulundu. Tüm yazarlar makalenin son halini okudu ve onayladı.

        Finansman
        Bu çalışma, Eğitim, Gençlik ve Spor Bakanlığı (LM2015062 Czech-BioImaging ve CZ.02.1.01 / 0.0 / 0.0 / 16_013 / 0001775) ve Çek Cumhuriyeti Sağlık Bakanlığı (NV19-05-00191) tarafından desteklenmiştir.


        Şuraya gidin: Referanslar

        1. Singh SK, Girschick HJ. Lyme hastalığı spiroket Borrelia burgdorferi'nin moleküler hayatta kalma stratejileri . Lancet Infect Dis. 2004; 4 : 575–583. doi: 10.1016 / S1473-3099 (04) 01132-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Hovius J, van Dam AP, Fikrig E. Lyme borreliyozunda kene-konakçı-patojen etkileşimleri. Trendler Parasitol. 2007; 23 : 434–438. doi: 10.1016 / j.pt.2007.07.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        3. Fikrif E, Narasimhan S. Borrelia burgdorferi -gizli seyahat mi ediyorsunuz? Microb Infect. 2006; 8 : 1390–1399. doi: 10.1016 / j.micinf.2005.12.022. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Kraiczy P. Saklambaç: Lyme hastalığı spiroketlerinin tamamlayıcı saldırının üstesinden nasıl geldiği. Ön Immunol. 2016; 7 : 385. doi: 10.3389 / fimmu.2016.00385. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        5. Dunham-Ems SM, Caimano MJ, Pal U, Wolgemuth CW, Eggers CH, Balic A, vd. Canlı görüntüleme, keneler içinde Borrelia burgdorferi'nin iki fazlı bir yayılma modunu ortaya koymaktadır . J Clin Investig. 2009; 119 : 3652–3665. doi: 10.1172 / JCI39401. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        6. Samuels DS. Borrelia burgdorferi'de gen düzenlemesi . Annu Rev Microbiol. 2011; 2011 (65): 479–499. doi: 10.1146 / annurev.micro.112408.134040. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        7. Drecktrah D, Lybecker M, Popitsch N, Rescheneder P, Hall LS, Samuels DS. Borrelia burgdorferi RelA / spot homologu ve sıkı yanıt açlık sırasında kene vektörü ve küresel gen ekspresyonunda hayatta kalmasını regüle. PLoS Pathog. 2015; 11 : e1005160. doi: 10.1371 / journal.ppat.1005160. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        8. Brorson O, Brorson SH. Borrelia burgdorferi'nin kistik formlarını oluşturmak için hızlı bir yöntem ve bunların hareketli spiroketlere dönüşü. APMIS. 1998; 106 : 1131–1141. doi: 10.1111 / j.1699-0463.1998.tb00269.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Akins DR, Bourell KW, Caimano MJ, Norgard MV, Radolf JD. Memeli konakçıya uyarlanmış durumda Lyme hastalığı spiroketlerini incelemek için yeni bir hayvan modeli. J Clin Investig. 1998; 101 : 2240–2250. doi: 10.1172 / JCI2325. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        10. Carroll JA, Garon CF, Schwan TG. Çevresel pH'ın Borrelia burgdorferi membran proteinleri üzerindeki etkileri . Infect Immun. 1999; 67 : 3181–3187. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        11. Hodzic E, Feng S, Freet KJ, Barthold SW. Borrelia burgdorferi popülasyon dinamikleri ve immünokompetan ve immün yetmezliği olan farelerin enfeksiyonu sırasında prototip gen ifadesi Infect Immun. 2003; 71 : 5042–5055. doi: 10.1128 / IAI.71.9.5042-5055.2003. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        12. Feng J, Shi W, Zhang S, Zhang YP. Borrelia burgdorferi'deki kalıcı mekanizmalar : iyileştirilmiş müdahale için çıkarımlar. EMI. 2015; 4 : e51. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        13. Wu Q, Guan G, Liu Z, Li Y, Luo J, Yin H. Patojenite ile bağlantılı Borrelia burgdorferi gen ekspresyonundaki değişikliklerin RNA-Seq bazlı analizi . Parazitler Vektörler. 2015; 8 : 155. doi: 10.1186 / s13071-014-0623-2. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        14. Alban PS, Johnson PW, Nelson DR. Borrelia burgdorferi'nin protein sentezi ve morfolojisinde serum açlığının neden olduğu değişiklikler . Mikrobiyoloji. 2000; 146 : 119–127. doi: 10.1099 / 00221287-146-1-119. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        15. Gruntar I, Malovrh T, Murgia R, Cinco M. Borrelia garinii kistik formlarının in vivo hareketli spiroketlere dönüşümü . APMIS. 2001; 109 : 383–388. doi: 10.1034 / j.1600-0463.2001.090507.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        16. Lewis K. Persister hücreleri. Annu Rev Microbiol. 2010; 64 : 357–372. doi: 10.1146 / annurev.micro.112408.134306. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        17. Hodzic E, Imai D, Feng S, Barthold SW. Farelerde antibiyotik tedavisinin ardından ısrarla yetiştirilemeyen Borrelia burgdorferi'nin yeniden canlanması . PLoS ONE. 2014; 9 : e86907. doi: 10.1371 / journal.pone.0086907. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        18. Lyme hastalığının nedensel ajanı olan Sharma B, Brown AV, Matluck NE, Hu LT, Lewis K. Borrelia burgdorferi , ilaca toleranslı persister hücreler oluşturur. Antimicrob Agents Chemother. 2015; 59 : 4616–4624. doi: 10.1128 / AAC.00864-15. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        19. Cabello FC, Godfrey HP, Newman SA. Açıkta saklı: Borrelia burgdorferi ve hücre dışı matris. Trends Microbiol. 2007; 15 : 350–354. doi: 10.1016 / j.tim.2007.06.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. Tilly K, Rosa PA, Stewart PE. Borrelia burgdorferi ile enfeksiyonun biyolojisi . Infect Dis Clin N Am. 2007; 22 : 217–234. doi: 10.1016 / j.idc.2007.12.013. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        21. Liang FT, Brown EL, Wang T, Iozzo RV, Fikrig E. Borrelia burgdorferi'nin humoral bağışıklıktan kaçması için koruyucu niş . Ben J Pathol. 2004; 165 : 977–985. doi: 10.1016 / S0002-9440 (10) 63359-7. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        22. Yrjänäinen H, Hytonen J, Soderstrom KO, Oksi J, Hartiala K, Viljanen MK. Bitkisel spiroketlerin antibiyotik tedavisi ile ortadan kaldırılmasından sonra Borrelia garinii ile enfekte farelerde kalıcı eklem şişmesi ve Borrelia'ya özgü antikorlar . Microbes Infect. 2006; 8 : 2044–2051. doi: 10.1016 / j.micinf.2006.03.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        23. Hodzic E, Feng S, Holden K, Freet KJ, Barthold SW. Farelerde antibiyotik tedavisinin ardından Borrelia burgdorferi'nin kalıcılığı . Antimicrob Agents Chemother. 2008; 52 : 1728–1736. doi: 10.1128 / AAC.01050-07. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        24. Barthold SW, deSouza MS, Janotka JL, Smith AL, Persing DH. Laboratuvar faresinde kronik Lyme borreliosis. Ben J Pathol. 1993; 143 : 951–971. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        25. Barthold SW, Hodzic E, Imai DM, Feng S, Yang X, Luft BJ. Kalıcı Borrelia burgdorferi'ye karşı tigesiklinin etkisizliği . Antimicrob Agents Chemother. 2010; 54 : 643–651. doi: 10.1128 / AAC.00788-09. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        26. Bockenstedt LK, Gonzalez DG, Haberman AM, Belperron AA. Spiroket antijenleri, murin Lyme borreliosis tedavisinden sonra kıkırdağın yakınında kalır. J Clin Investig. 2012; 122 : 2652–2660. doi: 10.1172 / JCI58813. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        27. Yrjänäinen H, Hytönen J, Song XR, Oksi J, Hartiala K, Viljanen MK. Anti-tümör nekroz faktörü-a tedavisi, C3H / He farelerinde seftriakson tedavisinden 4 hafta sonra Borrelia burgdorferi spiroketlerini aktive eder . J Infect Dis. 2007; 195 : 1489–1496. doi: 10.1086 / 513873. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        28. Yrjänäinen H, Hytönen J, Hartiala P, Oksi J, Viljanen MK. Eklemlere bitişik eklem ve dokudaki Borrelia burgdorferi DNA'sı, seftriakson ile tedavi edilen farelerde kalıcı burgdorferi'nin nişidir. APMIS. 2010; 118 : 665–673. doi: 10.1111 / j.1600-0463.2010.02615.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        29. Baum E, Hue F, Barbour AG. Rezervuar türü Peromyscus leucopus'un bir Lyme hastalığı ajanı olan Borrelia burgdorferi'nin çeşitli suşları ile deneysel enfeksiyonları . MBio. 2012; 3 : e00434-12. doi: 10.1128 / mBio.00434-12. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        30. Schwan TG, Burgdorfer W, Schrumpf ME, Karstens RH. İdrar kesesi: Deneysel olarak enfekte olmuş beyaz ayaklı farelerde ( Peromyscus leucopus ) tutarlı bir Borrelia burgdorferi kaynağı J Clin Microbiol. 1988; 26 : 893–895. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        31. Moody KD, Barthold SW, Terwilliger GA, Beck DS, Hansen GM, Jacoby RO. Lewis sıçanlarında deneysel kronik Lyme borreliosis. Ben J Trop Med Hyg. 1990; 42 : 65–74. doi: 10.4269 / ajtmh.1990.42.165. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        32. Duray PH, Johnson RC. Lyme hastalığı spiroketiyle deneysel olarak enfekte olmuş hamsterlerin histopatolojisi, Borrelia burgdorferi . Proc Soc Exp Biol Med. 1986; 181 : 263–269. doi: 10.3181 / 00379727-181-42251. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        33. Goodman JL, Jurkovich P, Kodner C, Johnson RC. Deneysel olarak enfekte olmuş Suriye hamsterlerinde Borrelia burgdorferi ile kalıcı kalp ve idrar yolu enfeksiyonları . J Clin Microbiol. 1991; 29 : 894–896. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        34. Sonnesyn SW, Manivel JC, Johnson RC, Goodman JL. Lyme hastalığı için bir kobay modeli. Infect Immun. 1993; 61 : 4777–4778. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        35. Schmitz JL, Schell RF, Lovrich SD, Callister SM, Coe JE. Deneysel olarak enfekte LSH hamsterlerinde Borrelia burgdorferi'ye karşı koruyucu antikor tepkisinin karakterizasyonu . Infect Immun. 1991; 59 : 1916–1921. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        36. Preac-Mursic V, Patsouris E, Wilske B, Reinhardt S, Gos B, Mehraein P. Borrelia burgdorferi'nin kalıcılığı ve deneysel olarak enfekte hayvanlarda histopatolojik değişiklikler; insan Lyme hastalığında histopatolojik bulgularla karşılaştırma. Enfeksiyon. 1990; 18 : 332–341. doi: 10.1007 / BF01646399. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        37. Straubinger RK, Summers BA, Chang YF, Appel MJ. Borrelia burgdorferi'nin antibiyotik tedavisinden sonra deneysel olarak enfekte köpeklerde kalıcılığı . J Clin Microbiol. 1997; 35 : 111–116. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        38. Straubinger RK, Straubinger AF, Summers BA, Jacobson RH. Borrelia burgdorferi enfeksiyonunun antibiyotik tedavisinden sonraki durumu ve kortikosteroidlerin etkileri: deneysel bir çalışma. J Infect Dis. 2000; 181 : 1069–1081. doi: 10.1086 / 315340. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        39. Straubinger RK, Straubinger AF, Jacobson RH, Chang Y, Summers BA, Erb HN, et al. Lyme hastalığının köpek modelinden iki ders: Borrelia burgdorferi'nin dokulara göçü ve antibiyotik tedavisinden sonra kalıcılığı. J Spirochetal Tick Borne Dis. 1997; 4 : 24–31. [ Google Scholar ]
        40. Chang YF, Ku YW, Chang CF, Chang CD, McDonough SP, Divers T, vd. Deneysel olarak Borrelia burgdorferi ile enfekte midillilerin antibiyotik tedavisi . Vet Microbiol. 2005; 107 : 285–294. doi: 10.1016 / j.vetmic.2005.02.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        41. Imai DM, Barr BC, Daft B, Bertone JJ, Feng S, Hodzic E, vd. 2 atta Lyme nöroborelyoz. Vet Pathol. 2011; 48 : 1151–1157. doi: 10.1177 / 0300985811398246. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        42. James FM, Engiles JB, Beech J. Menenjit, kraniyal nevrit ve bir atta Borrelia burgdorferi enfeksiyonu ile bağlantılı radikülonevrit . J Am Vet Med A. 2010; 10 : 1180–1185. doi: 10.2460 / javma.237.10.1180. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        43. Embers ME, Hasenkampf NR, Jacobs MB, Tardo AC, Doyle-Meyers LA, Philipp MT, et al. Kene beslemesiyle Borrelia burgdorferi'ye maruz kalan insan olmayan primatlarda değişken belirtiler, çeşitli seroreaktivite ve tedavi sonrası kalıcılık . PLoS ONE. 2017; 12 : e0189071. doi: 10.1371 / journal.pone.0189071. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        44. Roberts ED, Bohm RP, Jr, Cogswell FB, Lanners HN, Lowrie RC, Jr, vd. Rhesus maymununda kronik Lyme hastalığı. Laboratuvar Araştırması. 1995; 72 : 146–160. [ PubMed ] [ Google Akademik ]
        45. Roberts ED, Bohm RP, Jr, Lowrie RC, Jr, Habicht G, Katona L, Piesman J, vd. Rhesus maymununda Lyme nöroborelyozunun patogenezi: periferik sinir sisteminde hastalığın erken yayılmış ve kronik evreleri. J Infect Dis. 1998; 178 : 722–732. doi: 10.1086 / 515357. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        46. Cadavid D, Bai Y, Hodzic E, Narayan K, Barthold SW, Pachner AR. Lyme hastalığı spiroket Borrelia burgdorferi ile enfekte insan dışı primatlarda kardiyak tutulum . Laboratuvar Araştırması. 2004; 84 : 1439–1450. doi: 10.1038 / labinvest.3700177. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        47. Hefty PS, Brooks CS, Jett AM, White GL, Wikel SK, Kennedy RC, vd. OspE ile ilgili, OspF ile ilgili ve Elp lipoproteinleri, deneysel olarak Borrelia burgdorferi ile enfekte olmuş babunlarda ve insan Lyme hastalığı hastalarında immünojeniktir . J Clin Microbiol. 2002; 40 : 4256–4265. doi: 10.1128 / JCM.40.11.4256-4265.2002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        48. Stricker RB, Johnson L. Kronik Lyme hastalığında kalıcı enfeksiyon: oluşturur mu? Res J Infect Dis. 2013; 1 : 2. doi: 10.7243 / 2052-5958-1-2. [ CrossRef ] [ Google Akademik ]
        49. Embers ME, Barthold SW, Borda JT, Bowers L, Doyle L, Hodzic E, vd. Yaygın enfeksiyonun antibiyotik tedavisini takiben rhesus makaklarında Borrelia burgdorferi'nin kalıcılığı . PLoS ONE. 2012; 7 : e29914. doi: 10.1371 / journal.pone.0029914. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        50. Steere AC, Malawista SE, Hardin JA, Ruddy S, Askenase PW, Andiman WA. Eritema kronikum migrans ve Lyme artriti: genişleyen klinik spektrum. Ann Intern Med. 1977; 86 : 685–698. doi: 10.7326 / 0003-4819-86-6-685. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        51. Middelveen MJ, Sapi E, Burke J, Filush KR, Franco A, Fesler MC, vd. Devam eden Lyme hastalığı semptomları olan hastalarda kalıcı borrelia enfeksiyonu. Sağlık hizmeti. 2018; 6 : 33. doi: 10.3390 / healthcare6020033. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        52. Berger BW. Lyme hastalığının eritema kronikum migransını tedavi etmek. J Am Acad Dermatol. 1986; 3 : 459–463. doi: 10.1016 / S0190-9622 (86) 70194-1. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        53. Liegner KB, Shapiro JR, Ramsay D, Halperin AJ, Hogrefe W, Kong L. Devam eden Borrelia burgdorferi hastasında minosiklin ile uzatılmış antibiyotik tedavisine rağmen tekrarlayan eritema migrans . J Am Acad Dermatol. 1993; 28 : 312–314. doi: 10.1016 / 0190-9622 (93) 70043-S. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        54. Schmidli J, Hunziker T, Moesli P, Schaad UB. Lyme borreliosis'e bağlı yüz felci tedavisinden üç ay sonra eklem sıvısından Borrelia burgdorferi yetiştirilmesi . J Inf Dis. 1988; 158 : 905–906. doi: 10.1093 / infdis / 158.4.905. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        55. Dattwyler RJ, Volkman DJ, Luft BJ, Halperin JJ, Thomas J, Golightly MG. Seronegatif Lyme hastalığı. Borrelia burgdorferi'ye spesifik T ve B lenfosit yanıtının ayrışması . N Engl J Med. 1988; 319 : 1441–1446. doi: 10.1056 / NEJM198812013192203. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        56. Weber K, Bratzke HJ, Neubert U, Wilske B, Duray PH. Hamilelik sırasında Lyme borreliyozu için oral penisiline rağmen yenidoğanda Borrelia burgdorferi . Pediatr Infect Dis J. 1988; 7 : 286–289. doi: 10.1097 / 00006454-198804000-00010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        57. Steere AC, Duray PH, Kasap EC. Lyme sinovitinde spiroketal antijenler ve lenfoid hücre yüzey belirteçleri. Romatoid sinovyum ve tonsiller lenfoid doku ile karşılaştırma. Artrit Romalı. 1988; 31 : 487–495. doi: 10.1002 / art.1780310405. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        58. Preac-Mursic V, Weber K, Pfister HW, Wilske B, Gross B, Baumann A, vd. Lyme borreliosisli antibiyotik tedavisi gören hastalarda Borrelia burgdorferi'nin sağkalımı . Enfeksiyon. 1989; 17 : 355–359. doi: 10.1007 / BF01645543. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        59. Girschick HJ, Huppertz HI, Rüssmann H, Krenn V, Karch H. Borrelia burgdorferi'nin insan sinovyal hücrelerinde hücre içi kalıcılığı . Rheumatol Int. 1996; 16 : 125–132. doi: 10.1007 / BF01409985. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        60. Cimmino MA, Azzolini A, Tobia F, Pesce CM. Kronik Lyme hastalığı olan bir hastanın dalağındaki spiroketler. Ben J Clin Pathol. 1989; 91 : 95–97. doi: 10.1093 / ajcp / 91.1.95. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        61. Pfister HW, Preac-Mursic V, Wilske B, Schielke E, Sorgel F, Einhaupl KMJ. Lyme nöroborelyozda seftriakson ve sefotaksimin randomize karşılaştırması. Infect Dis. 1991; 163 : 311–318. doi: 10.1093 / infdis / 163.2.311. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        62. Logigian EL, Kaplan RF, Steere AC. Lyme hastalığının kronik nörolojik belirtileri. N Engl J Med. 1990; 323 : 1438–1444. doi: 10.1056 / NEJM199011223232102. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        63. Battafarano DF, Combs JA, Enzenauer RJ, Fitzpatrick JE. Borrelia burgdorferi'nin neden olduğu kronik septik artrit . Clin Orthop. 1993; 297 : 238–241. [ PubMed ] [ Google Akademik ]
        64. Häupl T, Hahn G, Rittig M, Krause A, Schoerner C, Schonherr U, vd. Kronik Lyme borreliosisli bir hastadan alınan bağ dokusunda Borrelia burgdorferi'nin kalıcılığı . Artrit Romalı. 1993; 36 : 1621–1626. doi: 10.1002 / art.1780361118. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        65. Strle F, Preac-Mursic V, Cimperman J, Ruzic E, Maraspin V, Jereb M. Azitromisine karşı doksisiklin eritema migrans tedavisi için: klinik ve mikrobiyolojik bulgular. Enfeksiyon. 1993; 21 : 83–88. doi: 10.1007 / BF01710737. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        66. Preac-Mursic V, Pfister HW, Spiegel H, Burk R, Wilske B, Reinhardt S, vd. Borrelia burgdorferi'nin iris biyopsisinden ilk izolasyonu . J Clin Neuroophthalmol. 1993; 13 : 155–161. [ PubMed ] [ Google Akademik ]
        67. Strle F, Maraspin V, Lotric-Furlan S, Ruziç-Sabljiç E, Cimperman J. Borrelia kültürü pozitif eritema migrans tedavisi için Azitromisin ve doksisiklin . Enfeksiyon. 1996; 24 : 64–68. doi: 10.1007 / BF01780661. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        68. Preac-Mursic V, Marget W, Busch U, Pleterski Rigler D, Hagl S. Lyme borreliosis tedavisi ile ilgili Borrelia burgdorferi'nin öldürme kinetiği ve bakteriyel bulgular. Enfeksiyon. 1996; 24 : 9–16. doi: 10.1007 / BF01780643. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        69. Shadick NA, Phillips CB, Logigian EL, Steere AC, Kaplan RF, Berardi VP, vd. Lyme hastalığının uzun vadeli klinik sonuçları. Nüfus temelli retrospektif bir kohort çalışması. Ann Int Med. 1994; 121 : 560–567. doi: 10.7326 / 0003-4819-121-8-199410150-00002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        70. Oksi J, Kalimo H, Marttila RJ, Marjamäki M, Sonninen P, Nikoskelainen J, vd. Lyme borreliosis'te inflamatuar beyin değişiklikleri. Üç hasta hakkında bir rapor ve literatürün gözden geçirilmesi. Beyin. 1996; 119 : 2143–2154. doi: 10.1093 / beyin / 119.6.2143. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        71. Priem S, Burmester GR, Kamradt T, Wolbart K, Rittig MG, Krause A. Borrelia burgdorferi'nin , antibiyotik tedavisinden sonra devam eden Lyme artriti olan hastalardan alınan sinoviyal sıvıda değil, sinoviyal membranda polimeraz zincir reaksiyonu ile saptanması . Ann Rheum Dis. 1998; 57 : 118–121. doi: 10.1136 / ard.57.2.118. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        72. Oksi J, Marjamaki M, Nikoskelainen J, Viljanen MK. Borrelia burgdorferi , yaygın Lyme borreliyozunun klinik nüksünde kültür ve PCR ile tespit edildi. Ann Med. 1999; 31 : 225–232. doi: 10.3109 / 07853899909115982. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        73. Weber K. Eritema migransında tedavi başarısızlığı: bir inceleme. Enfeksiyon. 1996; 24 : 73–75. doi: 10.1007 / BF01780663. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        74. Honegr K, Hulínská D, Beran J, Dostál V, Havlasová J, Čermáková Z. Antibiyotik tedavisinden sonra Borrelia burgdorferi sensu lato'nun uzun süreli ve tekrarlanan elektron mikroskobu ve PCR ile saptanması . Cent Eur J Halk Sağlığı. 2004; 12 : 6-11. [ PubMed ] [ Google Akademik ]
        75. Breier F, Khanakah G, Stanek G, Kunz G, Aberer E, Schmidt B, vd. Genelleştirilmiş ülseratif büllöz liken sklerosus et atrofikusu olan seronegatif bir hastada bir cilt lezyonundan Borrelia afzelii izolasyonu ve polimeraz zincir reaksiyonu tiplemesi . Br J Dermatol. 2001; 144 : 387–392. doi: 10.1046 / j.1365-2133.2001.04034.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        76. Hunfeld KP, Ruzic-Sabljic E, Norris DE, Kraiczy P, Strle F. Antimikrobiyal kemoterapiden önce ve sonra eritema migrans hastalarından kültürlenen Borrelia burgdorferi sensu lato izolatlarının in vitro duyarlılık testi . Antimicrob Agents Chemother. 2005; 49 : 1294–1301. doi: 10.1128 / AAC.49.4.1294-1301.2005. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        77. Hudson BJ, Stewart M, Lennox VA, Fukunaga M, Yabuki M, Macorison H, vd. Kültür pozitif Lyme borreliosis. Med J Aust. 1998; 168 : 500–502. doi: 10.5694 / j.1326-5377.1998.tb141415.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        78. Kirsch M, Ruben FL, Steere AC, Duray PH, Norden CW, Winkelstein A. Lyme hastalığı olan bir hastada ölümcül yetişkin solunum sıkıntısı sendromu. J Am Med Doç. 1988; 259 : 2737–2739. doi: 10.1001 / jama.1988.03720180063034. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        79. Şansölye MB, McGinnis DE, Shenot PJ, Kiilholma P, Hirsch IH. Lyme hastalığında idrar disfonksiyonu. J Urol. 1993; 149 : 26–30. doi: 10.1016 / S0022-5347 (17) 35989-X. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        80. Nocton JJ, Dressler F, Rutledge BJ, Rys PN, Persing DH, Steere AC. Lyme artritli hastalardan alınan sinovyal sıvıda polimeraz zincir reaksiyonu ile Borrelia burgdorferi DNA'sının saptanması . N Engl J Med. 1994; 330 : 229–234. doi: 10.1056 / NEJM199401273300401. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        81. Masters E. Sürekli yüksek doz oral amoksisilin tedavisinden sonra spiroketemi. Infect Dis Clin Uygulaması. 1994; 3 : 207–208. doi: 10.1097 / 00019048-199405000-00016. [ CrossRef ] [ Google Akademik ]
        82. Lawrence C, Lipton RB, Lowy FD, Coyle PK. Seronegatif kronik nükseden nöroborelyoz. Eur Neurol. 1995; 35 : 113–117. doi: 10.1159 / 000117104. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        83. Bayer ME, Zhang L, Bayer MH. Kronik Lyme hastalığı semptomları olan tedavi edilen hastaların idrarındaki Borrelia burgdorferi DNA'sı. 97 vakanın bir PCR çalışması. Enfeksiyon. 1996; 24 : 347–353. doi: 10.1007 / BF01716077. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        84. Nocton JJ, Bloom BJ, Rutledge BJ. Lyme nöroborelyozda beyin omurilik sıvısında polimeraz zincir reaksiyonu ile Borrelia burgdorferi DNA'sının tespiti. J Infect Dis. 1996; 174 : 623–627. doi: 10.1093 / infdis / 174.3.623. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        85. Rudenko N, Golovchenko M, Vancova M, Clark K, Grubhoffer L, Oliver JH., Jr Lyme hastalıkları için tipik olmayan tanımlanmamış bozuklukları ve semptomları olan hastalardan canlı Borrelia burgdorferi sensu lato spiroketlerinin izolasyonu . Clin Microbiol Infect. 2016; 22 : 267.e9–267.e15. doi: 10.1016 / j.cmi.2015.11.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        86. Shapiro ED. Tekrarlayan veya kalıcı Lyme hastalığı: Borrelia burgdorferi ile kalıcılık, tekrarlama veya yeniden enfeksiyon ? F1000Prime Rep.2015 ; 7 : 11. doi: 10.12703 / P7-11. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        87. Embers ME, Ramamoorthy R, Philipp MT. Lyme hastalığının etiyolojik ajanı olan Borrelia burgdorferi'nin hayatta kalma stratejileri . Microb Infect. 2004; 6 : 312–318. doi: 10.1016 / j.micinf.2003.11.014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        88. Steere AC. Lyme hastalığı. N Engl J Med. 2001; 345 : 115–125. doi: 10.1056 / NEJM200107123450207. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        89. Wormser GP, Dattwyler RJ, Shapiro ED, Halperin JJ, Steere AC, Klempner MS, vd. Lyme hastalığı, insan granülositik anaplazmozu ve babesiosis'in klinik değerlendirmesi, tedavisi ve önlenmesi: Infectious Diseases Society of America tarafından klinik uygulama kılavuzları. Clin Infect Dis. 2006; 43 : 1089–1134. doi: 10.1086 / 508667. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        90. Hu LT. Klinikte. Lyme hastalığı. Ann Intern Med. 2012; 157 : ITC2-2 – ITC2-16. doi: 10.7326 / 0003-4819-157-3-201208070-01002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        91. Hobby GL, Meyer K, Chaffee E. Penisilinin etki mekanizması üzerine gözlemler. Exp Biol Med. 1942; 50 : 281–285. doi: 10.3181 / 00379727-50-13773. [ CrossRef ] [ Google Akademik ]
        92. Daha Büyük JW. Stafilokok enfeksiyonlarının aralıklı sterilizasyon ile penisilin ile tedavisi. Lancet. 1944; 244 : 497–500. doi: 10.1016 / S0140-6736 (00) 74210-3. [ CrossRef ] [ Google Akademik ]
        93. Keren I, Kaldalu N, Spoering A, Wang Y, Lewis K. Persister hücreler ve antimikrobiyallere tolerans. FEMS Microbiol Lett. 2004; 230 : 13–18. doi: 10.1016 / S0378-1097 (03) 00856-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        94. Fauvart M, De Groote VN, Michiels J. Kronik enfeksiyonlarda persister hücrelerin rolü: anti-persister tedavilere ilişkin klinik ilgi ve bakış açıları. J Med Microbiol. 2011; 60 : 699–709. doi: 10.1099 / jmm.0.030932-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        95. Zhang Y. Persisters, kalıcı enfeksiyonlar ve Yin-Yang modeli. Emerg Microbes Infect. 2014; 3 : e3. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        96. Sapi E, Bastian SL, Mpoy CM, Scott S, Rattelle A, Pabbati N, vd. Borrelia burgdorferi ile in vitro biyofilm oluşumunun karakterizasyonu . PLoS ONE. 2012; 7 : e48277. doi: 10.1371 / journal.pone.0048277. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        97. Kurtti TJ, Munderloh UG, Johnson RC, Ahlstrand GG. Borrelia burgdorferi'de koloni oluşumu ve morfolojisi . J Clin Microbiol. 1987; 25 : 2054–2058. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        98. Aberer E, Kersten A, Klade H, Poitschek C, Jurecka W. Deride Borrelia burgdorferi'nin heterojenliği . Ben J Dermatopathol. 1996; 18 : 571–579. doi: 10.1097 / 00000372-199612000-00004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        99. Mursic VP, Wanner G, Reinhardt S, Wilske B, Busch U, Marget W. Borrelia burgdorferi sferoplast-L-form varyantlarının oluşumu ve yetiştirilmesi . Enfeksiyon. 1996; 24 : 218–226. doi: 10.1007 / BF01781096. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        100. Brorson O, Brorson SH. Borrelia burgdorferi'nin kistik formlarının normal, hareketli spiroketlere dönüşümü . Enfeksiyon. 1997; 25 : 240–246. doi: 10.1007 / BF01713153. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        101. Miklossy J, Kasas S, Zurn AD, McCall S, Yu S, McGeer PL. Borrelia burgdorferi'nin kalıcı atipik ve kistik formları ve Lyme borreliosis'te lokal inflamasyon. J Neuroinflamm. 2008; 5 : 40. doi: 10.1186 / 1742-2094-5-40. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        102. Sapi E, Kaur N, Anyanwu S, Luecke DF, Datar A, Patel S, vd. Borrelia burgdorferi'nin farklı morfolojik formlarının in vitro antibiyotik duyarlılığının değerlendirilmesi . Infect Drug Resist. 2011; 4 : 97–113. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        103. Meriläinen L, Herranen A, Schwarzbach A, Gilbert L. Borrelia burgdorferi pleomorfik formunun morfolojik ve biyokimyasal özellikleri . Mikrobiyoloji. 2015; 161 : 516–527. doi: 10.1099 / mikrofon.0.000027. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        104. Murgia R, Cinco M. Borrelia burgdorferi'de farklı stres koşulları ile kistik formların indüksiyonu . APMIS. 2004; 112 : 57–62. doi: 10.1111 / j.1600-0463.2004.apm1120110.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        105. Kersten A, Poitschek C, Rauch S, Aberer E. Penisilin, seftriakson ve doksisiklinin Borrelia burgdorferi morfolojisi üzerindeki etkileri . Antimicrob Agents Chemother. 1995; 39 : 1127–1133. doi: 10.1128 / AAC.39.5.1127. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        106. Brorson O, Brorson SH, Scythes J, MacAllister J, Wier A, Margulis L. Spiroket Borrelia burgdorferi yuvarlak cisim propagüllerinin (RB'ler) antibiyotik tigesiklin tarafından yok edilmesi. Proc Natl Acad Sci ABD. 2009; 106 : 18656–18661. doi: 10.1073 / pnas.0908236106. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        107. Caskey JR, Embers ME. In vitro Borrelia burgdorferi popülasyonları tarafından sürekli gelişim . Antimicrob Agents Chemother. 2015; 59 : 6288–6295. doi: 10.1128 / AAC.00883-15. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        108. Feng J, Wang T, Shi W, Zhang S, Sullivan D, Auwaerter PG, vd. Borrelia burgdorferi'ye karşı yeni aktivitenin belirlenmesi , FDA onaylı bir ilaç kitaplığı kullanılarak devam eder. EMI. 2014; 3 : e49. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        109. Feng J, Shi W, Zhang S, Sullivan D, Auwaerter PG, Zhang Y. Bir ilaç kombinasyonu taraması , bir FDA ilaç kütüphanesinden in vitro Borrelia burgdorferi'nin amoksisilin kaynaklı yuvarlak gövdelerine karşı aktif olan ilaçları tanımlar . Ön Microbiol. 2016; 7 : 743. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        110. Dubinina G, Grabovich M, Leshcheva N, Rainey FA, ​​Gavrish E. Spirochaeta perfilievii sp. nov., bir tuzlu su kaynağından izole edilmiş oksijene toleranslı, sülfür oksitleyen, sülfür ve tiyosülfat indirgeyen yeni bir spiroket. Int J Syst Evol Microbiol. 2011; 61 : 110–117. doi: 10.1099 / ijs.0.018333-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        111. Droge S, Frohlich J, Radek R, Konig H. Spirochaeta coccoides sp. nov., Neotermes castaneus termitinin arka bağırsağından yeni bir kokoid spiroket . Appl Environ Microbiol. 2006; 72 : 391–397. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        112. Dutton JE, Todd JL. Kongo Özgür Devleti'nin doğu kesiminde insan kene ateşinin doğası. Liverpool Sch Trop Med Hyg. 1905; 17 : 1–18. [ Google Scholar ]
        113. Hoogenraad NJ, Hird FJR, Holmes I, Millis NF. Koyunların rumen içeriklerinde bakteriyofajlar. J Gen Virol. 1967; 1 : 575–576. doi: 10.1099 / 0022-1317-1-4-575. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        114. Sapi E, Balasubramanian K, Poruri A, Maghsoudlou JS, Theophilus PAS, Socarras KM, vd. Borrelia lenfositomalarda Borrelia biyofilminin in vivo varlığının kanıtı . Eur J Microbiol Immunol. 2016; 6 : 9–24. doi: 10.1556 / 1886.2015.00049. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        115. Eisendle K, Zelger B. Kutanöz borelyozun genişleyen spektrumu. G Ital Dermatol Venereol. 2009; 144 : 157–171. [ PubMed ] [ Google Akademik ]
        116. Olivares J, Bernardini A, Garcia-Leon G, Corona FB, Sanchez M, Martinez JL. Bakteriyel patojenlerin içsel rezistansı. Ön Microbiol. 2013; 4 : 103. doi: 10.3389 / fmicb.2013.00103. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        117. Feng J, Auwaerter PG, Zhang Y. Borrelia burgdorferi'ye karşı ilaç kombinasyonları in vitro devam eder : daptomisin, sefoperazon ve doksisiklin kullanılarak eradikasyon sağlanır. PLoS ONE. 2015; 10 : e0117207. doi: 10.1371 / journal.pone.0117207. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        118. Jefferson KK. Bakterileri biyofilm üretmeye iten nedir? FEMS Microbiol Lett. 2004; 236 : 163–173. doi: 10.1111 / j.1574-6968.2004.tb09643.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        119. Donlan RM, Costerton JW. Biyofilmler: klinik olarak ilgili mikroorganizmaların hayatta kalma mekanizmaları. Clin Microbiol Rev. 2002; 15 : 167–193. doi: 10.1128 / CMR.15.2.167-193.2002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        120. Lewis K. Riddle biyofilm direnci. Antimicrob Agents Chemother. 2001; 45 : 999–1007. doi: 10.1128 / AAC.45.4.999-1007.2001. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        121. O'Toole G, Kaplan HB, Kolter R. Mikrobiyal gelişim olarak biyofilm oluşumu. Annu Rev Microbiol. 2000; 54 : 49–79. doi: 10.1146 / annurev.micro.54.1.49. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        122. Costerton JW, Geesey GG, Cheng KJ. Bakteriler nasıl yapışır? Sci Am. 1978; 238 : 86–95. doi: 10.1038 / bilimselamerican0178-86. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        123. Vesey PM, Kuramitsu HK. Treponema denticola ATCC 35405 biyofilm oluşumunun genetik analizi . Microbiol. 2004; 150 : 2401–2407. doi: 10.1099 / mic.0.26816-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        124. Ristow P, Bourhy P, Kerneis S, Schmitt C, Prevost MC, Lilenbaum W, vd. Saprofitik ve patojenik leptospirlerle biyofilm oluşumu. Microbiol. 2008; 154 : 1309–1317. doi: 10.1099 / mic.0.2007 / 014746-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        125. Costerton JW, Lewandowski Z, Caldwell DE, Korber DR, Lappin-Scott HM. Mikrobiyal biyofilmler. Annu Rev Microbiol. 1995; 49 : 711–745. doi: 10.1146 / annurev.mi.49.100195.003431. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        126. Bayer AS, Speert DP, Park S, Tu J, Witt M, Nast CC, vd. Pseudomonas aeruginosa'nın antibiyotik kaynaklı ve polimorfonükleer lökosit aracılı öldürülmesinde mukoid ekzopolisakkaridin (aljinat) fonksiyonel rolü . Infect Immun. 1991; 59 : 302–308. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        127. Gacesa P. Bakteriyel aljinat biyosentezi: son gelişmeler ve gelecekteki beklentiler. Mikrobiyoloji. 1998; 144 : 1133–1143. doi: 10.1099 / 00221287-144-5-1133. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        128. Mah T-FC, O'Toole GA. Antimikrobiyal ajanlara biyofilm direncinin mekanizmaları. Trends Microbiol. 2001; 1 : 34–39. doi: 10.1016 / S0966-842X (00) 01913-2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        129. Costerton JW, Stewart PS, Greenburg EP. Kalıcı enfeksiyonların yaygın bir nedeni olan bakteriyel biyofilmler. Bilim. 1999; 284 : 1318–1322. doi: 10.1126 / science.284.5418.1318. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        130. Branda SS, Vik S, Friedman L, Kolter R. Biofilms: matris yeniden ziyaret edildi. Trends Microbiol. 2005; 13 : 20–26. doi: 10.1016 / j.tim.2004.11.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        131. Remminghorst U, Rehm BHA. Bakteriyel aljinatlar: biyosentezden uygulamalara. Biotechnol Lett. 2006; 28 : 1701–1712. doi: 10.1007 / s10529-006-9156-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        132. Kazmierczak MJ, Wiedmann M, Boor KJ. Alternatif sigma faktörleri ve bakteriyel virülansta rolleri. Microbiol Mol Biol Rev. 2005; 69 : 527–543. doi: 10.1128 / MMBR.69.4.527-543.2005. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        133. Ouyang Z, Narasimhan S, Neelakanta G, Kumar M, Pal U, Fikrig E, vd. Borrelia burgdorferi'nin enzootik yaşam döngüsü sırasında RpoN-RpoS düzenleyici yolunun aktivasyonu . BMC Microbiol. 2012; 12 : 44. doi: 10.1186 / 1471-2180-12-44. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        134. Dunham-Ems SM, Caimano MJ, Eggers CH, Radolf JD. Borrelia burgdorferi , keneden memeliye aktarımı sırasında vektör içinde yayılma için alternatif sigma faktörü RpoS'u gerektirir. PLoS Pathog. 2012; 8 : e1002532. doi: 10.1371 / journal.ppat.1002532. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        135. Sular CM, Bassler BL. Çekirdek algılama: bakterilerde hücreden hücreye iletişim. Annu Rev Cell Dev Biol. 2005; 21 : 319–346. doi: 10.1146 / annurev.cellbio.21.012704.131001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        136. Bassler BL. Bakteriler birbirleriyle nasıl konuşur: çekirdek algılama ile gen ifadesinin düzenlenmesi. Curr Opin Microbiol. 1999; 2 : 582–587. doi: 10.1016 / S1369-5274 (99) 00025-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        137. Schauder S, Shokat K, Surette MG, Bassler BL. LuxS bakteri otoindüktör ailesi: yeni bir yetersayı algılayan sinyal molekülünün biyosentezi. Mol Microbiol. 2001; 41 : 463–476. doi: 10.1046 / j.1365-2958.2001.02532.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        138. Theophilus PA, Victoria MJ, Socarras KM, Filush KR, Gupta K, Luecke DF, vd. Stevia rebaudiana tam yaprak ekstraktının in vitro olarak Borrelia burgdorferi'nin çeşitli morfolojik formlarına karşı etkinliği . Eur J Microbiol Immunol. 2015; 5 : 268–280. doi: 10.1556 / 1886.2015.00031. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        139. Feng J, Zhang S, Shi W, Zubcevik N, Miklossy J, Zhang Y. Baharat veya mutfak bitkilerinden elde edilen seçici uçucu yağlar, sabit faz ve biyofilm Borrelia burgdorferi'ye karşı yüksek aktiviteye sahiptir . Ön Ort. 2017; 4 : 169. doi: 10.3389 / fmed.2017.00169. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        140. Feng J, Shi W, Miklossy J, Tauxe GM, McMeniman CJ, Zhang Y. Sabit faz Borrelia burgdorferi'ye karşı güçlü aktiviteye sahip uçucu yağların tanımlanması . Antibiyotikler. 2018; 7 : 89. doi: 10.3390 / antibiyotik7040089. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5

          Borrelia Burgdorferi'nin Çeşitli Morfolojik Formlarına Karşı Stevia Rebaudiana Bütün Yaprak Ekstraktının İn Vitro Etkinliği

          PAS Theophilus , MJ Victoria , KM Socarras , KR Filush , K. Gupta , DF Luecke ve E. Sapi *
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
          Git: Soyut

          Lyme hastalığı, Borrelia burgdorferi'nin neden olduğu kene kaynaklı multisistemik bir hastalıktır . Antibiyotik verilmesi bu hastalığın birincil tedavisidir; bununla birlikte, nüks sıklıkla antibiyotik tedavisi kesildiğinde ortaya çıkar. Nüksün nedeni bilinmemektedir, ancak son çalışmalar antibiyotiğe dirençli Borrelia persister hücrelerinin ve biyofilmlerin varlığının olasılıklarını öne sürmüştür .

          Bu çalışmada, B. burgdorferi spiroketleri, kalıcılar ve biyofilm formlarına karşı bütün yaprak Stevia ekstraktının etkinliğini in vitro olarak değerlendirdik . Farklı formların duyarlılığı, farklı mikroskopi yöntemlerine ek olarak çeşitli kantitatif tekniklerle değerlendirildi. Stevia'nın etkinliği, doksisiklin, sefoperazon, daptomisin ve bunların kombinasyonları ile karşılaştırıldı. Sonuçlarımız Stevia'nın B. burgdorferi'yi ortadan kaldırmada önemli bir etkiye sahip olduğunu gösterdi.spiroketler ve ısrarcılar. Stevia ve antibiyotiklerle muamele edilmiş hücrelerle alt kültür deneyleri, yukarıda belirtilen antibiyotikler ve antibiyotik kombinasyonuna kıyasla sırasıyla %10 canlı hücre veren, 7 ve 14 gün boyunca kuruldu. Stevia ve üç antibiyotik, bağlı biyofilmlere karşı test edildiğinde, Stevia, B. burgdorferi formlarını önemli ölçüde azalttı . Bu çalışmadan elde edilen sonuçlar, Stevia yaprağı ekstresi gibi doğal bir ürünün B. burgdorferi'ye karşı etkili bir ajan olarak kabul edilebileceğini göstermektedir .

          Anahtar Kelimeler: Borrelia burgdorferi , biyofilmler, kalıcı hücreler, Stevia rebaudiana , antibiyotik direnci
          Git: Tanıtım

          Lyme hastalığı, spiroket Borrelia burgdorferi'nin neden olduğu önde gelen kene kaynaklı multisistemik bir hastalıktır . Bakteri, beyaz ayaklı fareler, kemirgenler, geyikler ve kuşlarla beslenebilen Ixodes keneleri tarafından bulaşır [ 1 , 2 ]. Amerika Birleşik Devletleri'nde her yıl Lyme hastalığı teşhisi konan yaklaşık 300.000 kişi vardır [ 3 ]. Lyme hastalığının ön saf tedavisi, yetişkinler için doksisiklin ve çocuklar için amoksisilin gibi antibiyotiklerdir [ 4-8 ]. Bu antibiyotiklerin Lyme hastalığı teşhisi konan hastaların çoğunda etkili olduğu bulunmuştur [ 5-8].]. Bununla birlikte, Hastalık Kontrol Merkezlerine (CDC) göre, önerilen 2 ila 4 hafta boyunca antibiyotiklerle tedavi edilen Lyme hastalığı hastalarının yaklaşık %10-20'si yorgunluk, ağrı veya eklem ve kas ağrıları semptomları yaşadı [ 9 ]. Bazı hastalarda semptomlar 6 aydan fazla sürdü [ 9 ]. Bu durum “tedavi sonrası Lyme hastalığı sendromu (PTLDS)” veya “kronik Lyme hastalığı” olarak adlandırıldı [ 9 ].

          Hastalarda bu durumla ilişkili mekanizma belirsizliğini koruyor. Kanıtlanmamış olsa da, bağışıklık sisteminin B. burgdorferi ısrarcılarını tamamen temizleyememesi [ 10 ] veya immünolojik tepkilere neden olabilen antijenik kalıntıların varlığı [ 11 ] gibi önerilen birkaç açıklama vardır . Borrelia'nın antibiyotik tedavisinden sonra konakçı immün klirensinden kaçınmasının bir başka olasılığı iyi anlaşılmamıştır [ 12 , 13 ].

          Fareler, köpekler ve insan olmayan primatlar üzerinde önceki in vivo çalışmalar, B. burgdorferi'nin doksisiklin, seftriakson ve tigesiklin gibi çeşitli antibiyotikler tarafından tamamen elimine edilemediğini göstermiştir . Ayrıca, yakın tarihli bir çalışma, 12 aylık antibiyotik tedavisinin ardından farelerde Borrelia DNA'sının varlığını göstermiştir [ 14 ]. Ancak, bu çalışmalarda Borrelia yetiştirme ortamında canlı organizmaların kültürü gerçekleştirilememiştir [ 14-17 ]. Yakın tarihli bir çalışma, antibiyotik tedavisinden sonra PTLDS'li bir hastadan Borrelia DNA'sının varlığını bildirdi [ 18]. Prospektif klinik çalışmalar, önemli bir etkili antibiyotik tedavisi göstermedi ve uzun süreli semptomları olan hastalarda B. burgdorferi'nin varlığının devam ettiğine dair kanıt gösteremedi [ 19 , 20 ]. Uzatılmış intravenöz seftriakson tedavisinin kullanıldığı diğer deneyler sadece yorgunluk semptomlarını iyileştirdi [ 21 ]. Özetle, bulgular geleneksel tedavilerin Borrelia ısrarcılarını tamamen ortadan kaldırmayabileceğini düşündürmektedir .

          B. burgdorferi'nin yaşam tarzı , spiroketler, sferoplast (veya L-formu), yuvarlak gövdeler ve biyofilmler gibi farklı morfolojik formlarda var olduğu için karmaşıktır [ 7 , 13 , 22–25 ]. Birkaç çalışma, Borrelia'nın sıcaklık değişiklikleri, yüksek veya düşük pH, açlık, antibiyotiğe maruz kalma ve/veya bağışıklık sisteminden gelen bir saldırı gibi koşullar elverişsiz hale geldiğinde yuvarlak gövdelere dönüşebileceğini göstermektedir [ 7 , 23-25 ]. Borrelia bu savunma formlarında uykuda, hareketsiz hale gelir ve spiroket formuna dönmek için uygun koşulları bulana kadar bu morfolojik durumda kalır [ 7 , 22]., 24 , 26 ]. B. burgdorferi için önerilen en etkili saklanma yeri , yakın zamanda önerilen biyofilm formudur [ 24 ]. Bakteriyel biyofilmler, polisakkaritler, lipid proteinleri, nükleik asitler ve diğer makromoleküllerin karmaşık bir karışımı olan, kendi ürettiği hidratlı polimerik matris veya hücre dışı polimerik maddeler (EPS) içine alınmış organize hücre topluluklarıdır [ 24 , 27 ]. Bu benzersiz matris, alttaki hücreleri antimikrobiyal ajanlardan korur [ 24 , 27 ]]. Patojenik bakterilerin biyofilm formlarında elimine edilmesi çok zordur, çünkü bu sesil bakteri hücreleri konakçının immün yanıtlarına dayanabilir ve antibiyotiklere veya diğer biyositlere bireysel planktonik karşılıklarına göre çok daha az duyarlıdır [ 24 , 27 ]. Biyofilm direnci, biyofilmde oluşan hücrelerin fenotipik değişiklikleri, akış pompalarının ekspresyonu ve antimikrobiyal ajanlara maruz kaldığında öldürmeye direnen kalıcı hücrelerin varlığı gibi birçok mekanizmaya dayanmaktadır [ 28 , 29 ].

          Yakın zamanda, B. burgdorferi'nin in vitro biyofilm oluşturabildiğine dair kanıt sağladık [ 24 ]. Biyofilmi ve hücre dışı polimerik maddeleri (EPS) oluşturan birkaç farklı koruyucu tabaka ile spiroket ve yuvarlak gövde formlarının agregasyonunun antibiyotik direncinde önemli bir faktör olduğu öne sürülmektedir [ 24 ]. Ayrıca biyofilmlerin daha yüksek kalıcı hücre popülasyonuna sahip olduğu ve bu formlarda gösterilen antimikrobiyal dirence yol açabileceği bildirilmektedir [ 24 , 29 ].

          Doksisiklinin B. burgdorferi üzerindeki in vitro etkilerine ilişkin daha önce yayınlanmış sonuçlarımız, farklı morfolojik formların antimikrobiyal ajanlara karşı benzersiz duyarlılıkları olduğunu göstermiştir [ 7 ]. J. Feng ve ark. doksisiklinin spiroketleri azaltmada etkili olduğunu, ancak B. burgdorferi'nin kalıcılarını azaltmada etkili olmadığını gösterdi [ 30 , 31 ]. Çalışmalar ayrıca doksisiklin ve amoksisilin'in B. burgdorferi'nin spiroket formunu ortadan kaldırabildiğini göstermiştir , ancak hareketsiz kalıcılar/biyofilm benzeri agregatlar/mikrokoloniler bu antibiyotiklere duyarlı değildir [ 7 , 31]. Bu nedenle, Borrelia'nın tüm morfolojik formlarını hedefleyebilecek/ortadan kaldırabilecek etkili ajanların bulunmasına acil ihtiyaç vardır .

          Binlerce yıldır kullanılan doğal antimikrobiyal ajanların çeşitli patojenlere karşı etkili olduğu gösterilmiştir [ 32 ]. Birçok in vitro ve klinik çalışma, bunların sadece B. burgdorferi'ye karşı değil, aynı zamanda diğer birçok patojene karşı da etkinliğini göstermiştir [ 33-38 ]. Asteraceae familyasına ait olan Stevia rebaudiana , tipik olarak bal yaprağı veya tatlı yaprak olarak anılır ve doğal tatlılığı nedeniyle sentetik tatlandırıcının doğal bir ikamesi olarak kullanılır [ 39-41].]. Stevia'nın yaprak özütü, austroinullin, β-karoten, dulcoside, nilacin, rebaudi oksitler, riboflavin, steviol, stevioside ve tiamin gibi birçok patojene karşı bilinen antimikrobiyal özelliklere sahip birçok fitokimyasala sahiptir [ 40 , 42 , 43 ]. Bu bileşiklerin rolü esas olarak bitkiyi mikrobiyal enfeksiyondan ve olumsuz çevre koşullarından korumaktır [ 38-43 ]. Stevia da iyi şeker hastalığı, yüksek tansiyon ve kilo kaybı [gibi pek çok hastalığın tedavisinde kullanımı için geleneksel tıpta bilinen 44 , 45]. Birkaç klinik çalışmada, fitokimyasal steviosidin hafif hipertansiyonu olan hastalarda kan basıncını düşürdüğü ve tip 2 diyabetli hastalarda kan şekerini düşürdüğü bildirilmiştir [ 44 , 45 ]. Ayrıca hastaların steviosid kullanımından kaynaklanan herhangi bir yan etkiyle karşılaşmadığı da gösterilmiştir [ 44 , 45 ].

          Laboratuvar ve klinik çalışmalarda Stevia yaprağı ekstraktının etkinliğini göz önünde bulundurarak, tüm farklı morfolojik formları in vitro olarak ortadan kaldırmak amacıyla Stevia'nın (bütün yaprak ekstraktları) Lyme hastalığına neden olan patojen B. burgdorferi'ye karşı antimikrobiyal potansiyelini değerlendirdik . Stevia yaprağı ekstresinin tamamını etkili bir şekilde değerlendirmek için, Stevia'nın antimikrobiyal etkisini antibiyotiklerle (doksisiklin, sefoperazon, daptomisin) ve yakın zamanda Borrelia kalıcılarına karşı etkili bulunan kombinasyonlarını karşılaştırdık .

          Git: Malzemeler ve yöntemler

          Bakteri kültürü koşulları ve ortam gereksinimleri

          B. burgdorferi suşu B31'in düşük geçişli izolatları ( ≤ 8) American Type Culture Collection'dan (ATCC 35210) elde edildi ve Barbour-Stoner-Kelly H (BSK-H) ortamında (Sigma, St Louis, MO) kültürlendi. %6 tavşan serumu ile (Pel-Freez®, Rogers, AR). Antibiyotik serbest kültürler 33 ° C'de steril 15 ml'lik cam tüplerde muhafaza ve inkübe edildi ° C,% 5 CO 2 . Logaritmik (log) aşaması için, 1 x 10 5 hücre / ml'lik cam tüplerde tohumlanmış ve 5 gün büyümesi sağlandı. Logaritmik faz üzerinde antimikrobik maddelerin etkinliği, 1 x 10 inoküle test edilmiştir 533 °C'de 5 gün inkübe edilen 96 oyuklu doku kültürü plakalarında (BD Falcon, Franklin Lakes, NJ) 90 µl BSK-H ortamında beş günlük büyütülmüş kültürden (sadece spiroketler içeren) spiroketler/ml % 5 CO ile 2 . Hücreler, iki günlük bir kuluçka döneminden sonra 3 gün boyunca antimikrobiyal maddelerle muamele edildi. Benzer şekilde, sabit faz için, 1 x 10 5 hücre / ml'lik cam tüplerde ekildi ve 7 gün süreyle büyümeye bırakıldı. Antimikrobiyal maddelerin etkinliği, 1 x 10 inoküle ile test edilmiştir 6 % 5 CO 33 ° C'de 8 gün süreyle inkübe edildi, 96 oyuklu bir doku kültürü plakasında BSK-H ortamının 90 ul spiroket / ml 2. Sabit fazdaki kalıcı hücreler, 5 günlük inkübasyondan sonra 3 gün boyunca antimikrobiyal ajanlarla muamele edildi. Biyofilmler aşılanması suretiyle üretildi 5 x 10 6 hücre / ml Borrelia spiroketler 1 fourwell bölme lamlarına BSK-H ortam ml'si (Thermo Scientific, Waltham, MA) veya plastik / kollajen kaplı doku kültürü 48 oyuklu plakalar (BD Falcon ), 33 ° C'de 7 gün süreyle inkübe edildi ki ° C,% 5 CO 2 . Biyofilmler için tedavi rejimi, durağan faz için olanla aynıydı. Bileşikler ve antibiyotik hazırlama

          Farklı stevia Nutramedix tarafından imal özler ® , Şimdi ® , tatlı yaprak ® ve Truvia ®ABD'deki sağlık gıda mağazalarından satın alındı ​​ve rastgele Stevia A, B, C ve D olarak etiketlendi. arıtılmış su. Stevioside (Sigma) %0.001 DMSO içinde hazırlandı ve ayrıca 1 x fosfat tamponlu salin (PBS, 0.1 M, pH 7.4, Sigma'dan) içinde seyreltildi. 10 µg/ml konsantrasyonda doksisiklin, sefoperazon ve daptomisin (Sigma) antibiyotikleri PBS içinde hazırlandı. Tüm antimikrobiyal ajanlar, 0.2 um'lik bir filtre ünitesi (EMD Millipore, Billerica, MA) kullanılarak sterilize edildi. Antibiyotik solüsyonları bölündü ve eksi 20 °C'de saklandı. Antimikrobiyal ajanların protein konsantrasyonlarının belirlenmesi

          Stevia ekstreleri A, B, C ve D'deki antimikrobiyal bileşenlerin konsantrasyonu bilinmediğinden, başlangıçta kullanılan konsantrasyon birimleri, 50 kısım çözelti başına (1:50 seyreltme) çözünen kısmının kullanımını içeriyordu. Antimikrobiyal maddelerin protein içeriği, standart olarak PBS pH 7.4'te 2 mg/ml bovin serum albümin stokunun (Sigma) seri dilüsyonları kullanılarak Bradford tahlili (Sigma) ile belirlendi. Üreticinin talimatlarına göre antimikrobiyal ajanlara Bradford reaktifi eklendi ve oda sıcaklığında hafifçe çalkalanarak 10 dakika inkübe edildi. Absorbans, bir BioTek spektrofotometre kullanılarak 595 nm'de ölçüldü. B. burgdorferi'nin in vitro antimikrobiyal duyarlılık testi

          Etkili antibiyotikler ve tanımlanan antibiyotik kombinasyonu [ 30 ] Stevia'nın B. burgdorferi üzerindeki etkinliğini karşılaştırmak ve değerlendirmek için test edildi . Pozitif kontrol olarak doksisiklin (10 µg/ml) kullanıldı. Negatif kontrol olarak, antibiyotikleri çözmek için pH 7.4'te 1 x PBS kullanıldı ve tüm Stevia özütü aynı alkol seyrelticisini içerdiğinden %25 alkol (Fisher Scientific, Pittsburg, PA) kullanıldı. SYBR Green I/PI testi

          Canlı ve ölü hücreleri değerlendirmek için standart SYBR Green I/propidium iyodür testi (SYBR Green I/PI) daha önce tarif edildiği gibi yapıldı [ 30 , 31 , 46 , 47 ]. 1 ml sterilize edilmiş distile suya, 10 µl SYBR Green I (10.000 x stok, Invitrogen, Grand Island, NY) ve 30 µl propidium iyodür (Thermo Scientific) kısaca karıştırıldı. B. burgdorferi içeren tüm kuyucuklara boyama karışımı (10 µl) eklendi ve karanlıkta 15 dakika inkübe edildi. Plakalar, uyarma dalga boyunu 485 nm'ye ve absorbans dalga boyunu 535 nm'ye (yeşil emisyon) ve 635 nm'ye (kırmızı emisyon) ayarlayarak bir floresan okuyucu (BioTek FLx800) kullanılarak ölçüldü. Standart denklem 1 × 10 6'dan belirlendiHücreler (logaritmik fazı), 5 x 10 6 hücre (sabit faz), ve 1 x 10 7 hücreleri (7 gün ve 14 gün alt kültür). Canlı ve ölü bir popülasyon hazırlandı. Ölü hücre popülasyonu için hücreler, 300 ul %70 izopropil alkol (Fisher Scientific) eklenerek öldürüldü. B. burgdorferi96 oyuklu plakanın oyuklarına farklı canlı/ölü hücre oranlarında (0:10, 2:8, 5:5, 8:2, 10:0) süspansiyonlar ilave edildi. Beş numunenin her birine boyama karışımı ilave edildi ve plaka yukarıdaki gibi okundu. En küçük kare uydurma analizi kullanılarak, canlı bakteri yüzdesi ile yeşil/kırmızı floresan oranları arasındaki regresyon denklemi hesaplandı. Tarama plakasının her bir örneğindeki canlı hücrelerin yüzdesini hesaplamak için regresyon denklemi kullanıldı. Ayrıca, muamele edilen numunenin görüntüleri, floresan mikroskopi (Leica DM2500) kullanılarak alınmıştır. B. burgdorferi'nin toplam canlı sayısı

          Bir doğrulama testi olarak, SYBR Green/PI ile boyanmış kültürler, bir bakteri sayma odası (Hausser Scientific, Horsham, PA) ve floresan mikroskopi (Leica DM2500) kullanılarak doğrudan canlı ve ölü bakteriler sayılarak hücre büyümesi açısından değerlendirildi. Yukarıdaki gibi, en küçük kare uydurma analizi kullanılarak, canlı bakteri yüzdesi ile yeşil/kırmızı floresan oranları arasındaki regresyon denklemi hesaplandı. Her numunedeki canlı hücrelerin yüzdesini hesaplamak için regresyon denklemi kullanıldı. Tedavi edilen B. burgdorferi durağan faz kültürünün canlılığını değerlendirmek için uzun süreli alt kültür deneyleri

          Muamele edilen durağan faz kültürlerinin taze ortamda yeniden büyüyüp gelişemeyeceğini değerlendirmek için 96 oyuklu plakalar 100 ul taze BSK-H ortamı ile dolduruldu. Muamele edilen durağan faz kültürlerinden, 100 ul taze BSK-H ortamı içeren steril bir 96 oyuklu plakaya (BD Falcon) 1:75 oranında muamele edilmiş sabit faz kültürü seyreltisi ilave edildi ve antimikrobiyal tedavi olmaksızın 7 gün ve 14 gün boyunca inkübe edildi. İnkübasyonun ardından canlılık, SYBR Green I/PI testi ve doğrudan sayım yöntemi kullanılarak değerlendirildi. Kristal menekşe biyofilm tahlili

          Antimikrobiyal ajanların biyofilmler üzerindeki etkinliği, kristal viyole boyama kullanılarak toplam biyokütlenin ölçülmesiyle belirlendi. İnkübasyonun ardından, ortam, plakanın yüzeyinde ekli biyofilmleri geride bırakarak yavaşça atıldı. Eklenen biyofilmler, örneklere 500 µl PBS (0.1 M, pH 7.4) eklenerek toplandı. Tüm santrifüjleme adımları 12.000 x g'de gerçekleştirilmiştir.oda sıcaklığında. Biyofilmler 5 dakika peletlendi ve süpernatant atıldı. Pelet üzerine 50 µl (%0.01) kristal viyole (Sigma) eklendi ve karışım oda sıcaklığında 15 dakika inkübe edildi. Bağlanmamış leke, biyofilmlerin 5 dakika peletlenmesi ve süpernatantın atılmasıyla çıkarıldı. Pelet 200 µl PBS ile yıkandı ve tekrar 5 dakika peletlendi. Lekeyi serbest bırakmak ve çözmek için pelete 200 µl %10 asetik asit (Sigma) eklenmesine ek olarak süpernatan atıldı. Numuneler daha sonra oda sıcaklığında 15 dakika inkübe edildi. Biyofilmler, 96 oyuklu bir plakaya aktarılan biyofilmlerden kristal menekşe lekesini çıkarmadan önce 5 dakika boyunca peletlendi ve bir BioTek spektrofotometre kullanılarak 595 nm'de absorbans ölçüldü. Canlı/ölü bakteri boyama tekniği

          Biyofilmlerin antimikrobiyal duyarlılığını görselleştirmek için, tedavi edilen biyofilmler SYBR Green (Invitrogen) ve propidium iyodür (Thermo Scientific) kullanılarak boyandı. Lekeler, SYBR Green I/PI tahlil protokolüne göre hazırlandı. Kamara slaytının her kuyucuğuna 5 µl boyama karışımı eklendi ve karanlıkta 15 dakika inkübe edildi. Medya, ekli biyofilmi rahatsız etmemek için dikkatlice çıkarıldı. Slaytlar kapatıldı ve floresan mikroskopi (Leica DM2500) kullanılarak görüntüler alındı. Atomik kuvvet mikroskopisi

          Cam oda slaytlarında (Thermo Scientific) büyütülen antimikrobiyal işlem görmüş biyofilmlerin morfolojisini görselleştirmek için ortam, biyofilmi bozmadan dikkatlice çıkarıldı. Havada temas modu AFM görüntülemesi, SHOCONG probları (APPNANO) kullanılarak bir Nanosurf Easyscan 2 AFM (Nanosurf) üzerinde gerçekleştirildi. Görüntüler Gwyddion yazılımı (Nečas ve Klapetek) kullanılarak işlendi. istatistiksel analiz

          İstatistiksel analizler iki kuyruklu Student kullanılarak yapıldı t GraphPad Prism kullanılarak -test (Microsoft Excel, Redmond, WA) ve grafikle ® 6.0 (La Jolla, CA). Tüm deneyler, deney başına en az üç numune ile en az üç ayrı kez gerçekleştirildi. Veriler kontrole göre normalleştirildi ve ortalama ± SD olarak sunuldu.

          Git: Sonuçlar

          Bu çalışmada, B. burgdorferi'nin farklı morfolojik formları (spiroketler, yuvarlak gövdeler ve biyofilmler) üzerindeki doksisiklin, sefoperazon ve daptomisin antibiyotikleri ile birlikte S. rebaudiana bütün yaprak ekstraktının antimikrobiyal etkisini karşılaştırdık ve değerlendirdik . Farklı antimikrobiyal tedavilerden sonra (kantitatif ve kalitatif olarak) log fazı ve durağan faz B. burgdorferi'nin canlılığını değerlendirmek için yakın zamanda geliştirilmiş yüksek verimli bir tarama yöntemi [ 30 , 31 , 46 ] kullandık ve doğrudan sayım yöntemleri ile birlikte önceki yayın [ 7 ]. Son çalışmalara benzer şekilde, hem log fazını değerlendirdik hem deBireysel spiroketlerden oluşan B. burgdorferi kültürleri, kalıcı hücrelerden oluşan durağan faz kültürleri ve bağlı yüzey biyofilmleri olan B. burgdorferi'nin en dirençli formu . Son olarak, antibiyotik tedavilerinden önce ve sonra ekli biyofilmlerdeki morfolojideki değişiklikleri görselleştirmek için yukarıda bahsedilen yöntemlerle bağlantılı olarak atomik kuvvet mikroskobu kullanıldı. Farklı Stevia özlerinin ön taraması

          Burada, SYBR Green/PI testini kullanarak daha ileri çalışmalar için en etkili ajanı bulmak için ilk olarak ticari olarak elde edilmiş dört farklı Stevia özütünü (3 alkol özütü ve bir toz formunda özüt) ve B. burgdorferi üzerinde saflaştırılmış Stevioside'ı değerlendirdik. Dört Stevia yaprağı ekstresinin protein konsantrasyonu, standart bir Bradford tahlili ile belirlendi ve 1.2 µg/ml ile 1.9 µg/ml arasında değişti. Steviosid, önceki bir çalışmada önerildiği gibi konsantrasyonda 100 ila 1000 µg/ml arasında test edildi [ 42 ].

          Ön tarama deneyleri için, SYBR Green/PI testini kullanarak log ve sabit fazlı Borrelia kültürlerindeki tüm ajanları farklı konsantrasyonlarda önceden test ettik . Sonuçlarımız, Stevia A, Stevia B ve Stevia C alkol ekstrakte edilmiş ajanların Borrelia hücrelerinin canlılığı üzerinde önemli etkileri olduğunu , ancak Stevia D, toz form ve Stevioside'ın hem log fazı hem de durağan faz üzerinde önemli bir etki göstermediğini gösterdi. hücreler.Şekil 1Stevia yaprağı ekstresi (D) ve Stevioside'ın toz formunun bu dirençli hücreler üzerinde hiçbir etkisi olmadığı halde, alkol ile ekstrakte edilmiş Stevia ajanlarının (A, B, C) Borrelia kalıcılarına karşı en etkili olduğunu gösteren temsili bir deneyi göstermektedir . Ayrıca, Stevia A, tüm deneylerde en umut verici etkiyi gösterdi ve bu nedenle, B. burgdorferi'nin farklı morfolojik formları üzerinde sonraki deneylerde Stevia A kullanıldı .
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı eujmi-05-268-g001.jpg
          1.
          SYBR Green/PI testi kullanılarak üç günlük bir tedaviden sonra B. burgdorferi'nin durağan fazında dört farklı Stevia ve Stevioside ekstraktının ön taraması . n = 3 ± SD, * p ≤ 0.05, ** p ≤ 0.01 kontrole kıyasla B. burgdorferi'nin farklı formlarını ortadan kaldırmada potansiyel bir ajan olarak Stevia

          Stevia'nın B. burgdorferi üzerindeki etkinliğini karşılaştırmak ve değerlendirmek için , yakın zamanda tanımlanan potansiyel antibiyotikler ve bunların kombinasyonları, hem günlük hem de durağan faz kültürlerinde SYBR Green I/PI testi kullanılarak Stevia A özü ile birlikte test edildi. Negatif kontroller olarak uygun miktarlarda 1 x PBS pH 7.4 ve %25 alkol kullanıldı.

          SYBR Green I/PI testi ve canlı/ölü görüntülere göre, 1× PBS veya %25 alkol ile tedavi, kontrole kıyasla spiroketten zengin log faz kültürünün ve kalıcılardan zengin durağan kültürlerin canlılığını önemli ölçüde azaltmadı (Şekil 2A, ve ​2C2C: i–iii ve ix–xi panelleri).Şekil 2C: i–iii ve ix–xi panelleri, kontrol B31 kültürünün, 1 x steril PBS'nin ve %25 alkolle işlenmiş kültürlerin yalnızca canlı hücrelerden (yeşil) oluştuğunu gösterdi.
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: eujmi-05-268-g002.jpg
          incir. 2.
          Log faz (5 gün) ve durağan faz (8 gün) Borrelia burgdorferi'nin üç günlük bir tedaviden sonra antimikrobiyal ajanlara duyarlılığı (A) SYBR Green I/PI testi, (B) kullanılarak boyanmış canlı ve ölü hücrelerin doğrudan sayımı floresan mikroskobu kullanılarak bir SYBR Green I ve propidium iyodür karışımı. (C) Günlük ve durağan faz B. burgdorferi'nin antimikrobiyal ajanlara karşı 200x büyütmede alınan temsili canlı/ölü görüntüleri (Ölçek çubuğu – 100 μm). Pozitif kontrol olarak doksisiklin (DoxC) kullanıldı. Negatif kontroller olarak sırasıyla 1 x PBS ve %25 alkol kullanıldı. Tüm antibiyotikler tek tek ve kombinasyon halinde 10 µg/ml konsantrasyonda kullanıldı. Stevia A, 1.2 µg/ml konsantrasyonda kullanıldı. n = 3 ± SD, *p ≤ 0.05, ** p ≤ 0.01 kontrol ile karşılaştırıldığında. n = 3 ± SD, + p ≤ 0.05, ++ p ≤ 0.01 (Stevia A ile karşılaştırıldığında doksisiklin). n = 3 ± SD, * p ≤ 0.05, ** p ≤ 0.01 (Stevia A ile karşılaştırıldığında doksisiklin). Kısaltmalar: doksisiklin – DoxC, sefoperazon – CefP, daptomisin – DapM

          Sonraki deney setinde, doksisiklin, sefoperazon ve daptomisin gibi B. burgdorferi üzerinde daha önce rapor edilmiş birkaç etkili antibiyotiği ayrı ayrı ve kombinasyonlar halinde test ettik [ 30 , 31 ].

          Doksisiklin, daha önce bildirildiği gibi [ 30 , 31 ] log faz B. burgdorferi'nin canlılığını kontrole kıyasla ~%99 oranında önemli ölçüde azaltabilmiştir (Şekil 2A, ve ​2C2C: panel iv). Bununla birlikte, doksisiklin tedavisinin, kontrole kıyasla antibiyotiğe maruz kaldıktan sonra canlı hücre oranının artmasıyla gözlemlendiği gibi, durağan faz kültürlerindeki hücreler üzerinde önemli bir etkisi olmadı (Şekil 2A, ve ​2C2C: panel xii).

          Daha önce Borrelia kalıcılarına karşı yüksek aktiviteye sahip ilaçlardan biri olarak tanımlanan 10 µg/ml sefoperazon [ 30 , 31 ], Borrelia'nın log faz canlılığını ~%99 oranında önemli ölçüde azalttı (Şekil 2A, ve ​2C2C: panel v) ancak bunun aksine, kontrole kıyasla sabit faz canlılığını yalnızca ~%18 azalttı (Şekil 2A) . Sabit faz kültüründe büyük bir canlı yuvarlak vücut formu popülasyonu ve canlı ve ölü spiroket hücrelerinin bir karışımı gözlendi (Şekil 2C: panel xiii).

          Daha önce Borrelia kalıcılarına karşı güçlü aktivite ile tanımlanan diğer ilaçlardan biri olan daptomisin [ 30 , 31 ], ayrıca canlı spiroketlerle zenginleştirilmiş log faz kültürünü ~% 23 oranında azalttı, ancak sabit fazdaki canlı hücreleri azaltmada daha az duyarlıydı ( Kontrole kıyasla (canlı hücrelerde ~%16 azalma) (Şekil 2A) . Görüntüler, hem log hem de sabit fazda daptomisin ile tedavi edilen hücrelerin, ölü hücrelerden daha fazla canlı hücre gösterdiğini göstermiştir (Şekil 2C: paneller vi ve xiv) kontrole kıyasla.

          Yakın tarihli bir çalışma, doksisiklin, sefoperazon ve daptomisin kombinasyonunun hem spiroketleri hem de persistanları başarıyla ortadan kaldırdığını bildirdi [ 30 ]. Bu çalışmadan elde ettiğimiz verilerimiz ayrıca canlı log fazlı spiroketleri (%100 etki) önemli ölçüde ortadan kaldırarak bu üç antibiyotik kombinasyonunun B. burgdorferi üzerindeki etkinliğini doğruladı ve ayrıca sabit faz kültürünün canlılığını ~%86 oranında önemli ölçüde azalttı (Şekil 2A, ve ​2C2C: paneller vii ve xv).

          Bu deneylerde ayrıca potansiyel antimikrobiyal ajan Stevia A'yı ayrı bir ajan olarak test ettik ve etkinliğini ayrı antibiyotikler ve üç antibiyotik kombinasyonuyla karşılaştırdık. İçindeŞekil 2A, ve ​2C2C: paneller viii ve xvi, Stevia A, log faz spiroketlerini ve sabit faz kalıcılarını kontrole kıyasla önemli ölçüde ortadan kaldırdı (her ikisi için %100 etki). Stevia A ile muamele edilen log fazı ve durağan faz kültürü sadece ölü hücrelere sahipti (Şekil 2C: paneller viii ve xvi).

          İçinde Şekil 2A, doksisiklin ve üç antibiyotik kombinasyonunun etkinliği Stevia A ile karşılaştırıldı. Stevia A ile doksisiklin ile karşılaştırıldığında kalıcılarda önemli bir eliminasyon ( p değeri ≤ 0.01) bulundu. Doğrudan sayım, Stevia A'nın log faz spiroketleri ve durağan faz bakımından zengin kalıcılar üzerindeki etkinliğini doğrular

          SYBR Green I/PI testi kullanılarak değerlendirilen antimikrobiyal ajanların etkinliğini daha fazla doğrulamak için daha önce tarif edildiği gibi doğrudan sayım yapıldı [ 7 , 31 ].

          Doğrudan sayım yöntemine göre, negatif kontroller, 1 x steril PBS ve %25 alkol, kontrole kıyasla hem log fazında hem de durağan fazda canlı hücre sayısını önemli ölçüde azaltmadı (Şekil 2B) . Doksisiklin, Borrelia'nın log faz canlılığını ~%98 oranında önemli ölçüde azaltırken , kontrole kıyasla durağan faz canlılığını azaltmadı (Şekil 2B) . Sefoperazon ayrıca log faz Borrelia'nın yaşayabilirliğini ~%99 oranında önemli ölçüde azaltmayı başardı (Şekil 2B) , durağan faz kültürlerindeki sefoperazon, kontrole kıyasla antibiyotiğe maruz kaldıktan sonra kalan canlı hücrelerin oranının artmasıyla gözlendiği gibi kalıcıları ortadan kaldırmada daha az etkiliydi (~%32 azalma).Şekil 2B, ve ​2C2C: panel xiii). Daptomisin, kontrole kıyasla canlı spiroketalle zenginleştirilmiş log faz kültürünü ~%44 oranında önemli ölçüde azalttı ve ayrıca durağan fazı ~%42 oranında önemli ölçüde azalttı (Şekil 2B) . Doksisiklin, sefoperazon ve daptomisinin üçlü antibiyotik kombinasyonu, log faz kültürünü ve ayrıca durağan faz kültürünü kontrole kıyasla ~%84 oranında önemli ölçüde ortadan kaldırdı (Şekil 2B) . Güçlü antimikrobiyal ajan Stevia A, log faz spiroketlerini önemli ölçüde ortadan kaldırdı ve kalıcıları ~%94 oranında önemli ölçüde azalttı (Şekil 2B) .

          İçinde Şekil 2B, doksisiklin ve üç antibiyotik kombinasyonlarının etkinliği Stevia A ile karşılaştırıldı. Stevia A ile doksisiklin ile karşılaştırıldığında persisterlerde önemli bir azalma ( p değeri ≤ 0.01) bulundu. Antimikrobiyal ile tedavi edilen B. burgdorferi'nin 7 günlük ve 14 günlük bir alt kültüründen sonra Stevia A'nın etkinliği

          Yukarıda sözü edilen deneylerde, Stevia A'nın hem spiroketler hem de Borrelia'nın kalıcıları üzerindeki etkinliğini gösterdik ve önemli etkisinin daha önce bildirilen üç antibiyotik kombinasyonuyla çok karşılaştırılabilir olduğuna dair veriler sağladık [ 31 ]. Stevia'nın kalıcılar üzerindeki etkinliğini doğrulamak için, kültürde hala kalan kalıcıların (varsa) tarafından test edilen taze ortamda yeniden büyüyüp çoğalmayacağını gözlemlemek için taze BSK-H ortamında 7 günlük ve 14 günlük bir alt kültür deneyi gerçekleştirdik. SYBR yeşil I/PI ve doğrudan sayma yöntemleri.

          Beklendiği gibi, negatif kontroller, 1 x PBS ve %25 alkol ile muamele, 7 ve 14 günlük bir alt kültürden sonra muamele edilmemiş B31 kontrolüne benzer baskın yeşil canlı hücrelerle ortamı başarıyla yeniden doldurmayı başardı (Şekil 3A, ve ​3C3C: i–iii ve ix–xi panelleri). Üç antibiyotik kombinasyonu ve sefoperazon, 7 günlük bir alt kültürden sonra canlı hücrelerin %5-7'si ile sonuçlandı, ancak sefoperazon ile tedavi edilen canlı hücrelerin sayısında %14'lük önemli bir artış ve ile tedavi edilen canlı hücrelerde %11'lik bir artış oldu. 14 günlük bir alt kültürden sonra üç antibiyotik kombinasyonu (Şekil 3A, ve ​3C3C: paneller v, vii, xiii ve xv). 7 günlük bir alt kültür ve 14 günlük bir alt kültürden sonra doksisiklin ile tedavi edilen numunedeki canlı hücrelerde sırasıyla %13 ve %53'lük önemli bir artış vardı (Şekil 3A, ve ​3C3C: paneller iv ve xii). Bununla birlikte, daptomisin ile tedavi, 7 günlük ve 14 günlük bir alt kültürden sonra baskın canlı hücreler üretti (Şekil 3A, ve ​3C3C: paneller vi ve xiv). İlginç bir şekilde, 7 günlük bir alt kültürden sonra sadece ölü hücreler (%100 eliminasyon) olduğundan ve 14 günlük bir alt kültürden sonra canlı hücrelerde sadece %10'luk bir artış gözlendiğinden, Stevia A ile tedavi edilen numunede yeniden büyüme olmadı (Şekil 3A, ve ​3C3C: paneller viii ve xvi).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı eujmi-05-268-g003.jpg
          Şekil 3.
          (A) SYBR Green I/PI testi ve SYBR Green karışımı kullanılarak boyanmış canlı ve ölü hücrelerin doğrudan sayımı ile belirlenen antimikrobiyal ajanlarla işleme tabi tutulmuş 8 günlük Borrelia burgdorferi sabit faz kültürünün 7 günlük ve 14 günlük bir alt kültürü I ve propidium iyodür, floresan mikroskopi kullanılarak. (B) 200 x büyütmede (Ölçek çubuğu – 100 μm) alınan antimikrobiyal ajanlarla tedavi edilen sabit faz B. burgdorferi üzerindeki 7 günlük bir alt kültürün temsili canlı/ölü görüntüleri . Pozitif kontrol olarak doksisiklin (DoxC) kullanıldı. Negatif kontroller olarak sırasıyla 1 x PBS ve %25 alkol kullanıldı. n = 3 ± SD, * p ≤ 0.05, ** p ≤ 0.01 kontrol ile karşılaştırıldığında.n = 3 ± SD, + p ≤ 0.05, ++ p < 0.01 (Stevia A ile karşılaştırıldığında doksisiklin). n = 3 ± SD, * p ≤ 0.05, ** p ≤ 0.01 (Stevia A ile karşılaştırıldığında doksisiklin). Kısaltmalar: doksisiklin – DoxC, sefoperazon – CefP, daptomisin – DapM

          İçinde Şekil 3A, 7 günlük ve 14 günlük bir alt kültürden sonra doksisiklin ve üç antibiyotik kombinasyonunun etkinliği Stevia A ile karşılaştırıldı. Doksisikline kıyasla Stevia A ile Borrelia'nın yeniden büyümesinde önemli bir azalma ( p değeri ≤ 0.05) bulundu 14 günlük bir alt kültürden sonra.

          Doğrudan mikroskobik sayım, SYBR Green I/PI testini doğruladı ve 7 günlük ve 14 günlük alt kültürlerde ilaçsız kontrollerin ve negatif kontrollerin (1× PBS ve %25 alkol) iyi geliştiğini gösterdi (Şekil 3B) . Doksisiklin, sefoperazon ve üçlü antibiyotik kombinasyonu ile tedavi edilen numuneler, 7 gün sonra ~%2 canlı hücre üretti (Şekil 3B) . Sefoperazon ve üç antibiyotik kombinasyonu, 14 günlük bir alt kültürden sonra ~%1 canlı hücre üretti (Şekil 3B) . Bununla birlikte, 14 günlük bir alt kültürden sonra doksisiklin ile tedavi edilen canlı hücrelerde %68'lik bir artış oldu (Şekil 3B) . Daptomisin ile tedavi edilen hücreler, 7 ve 14 günlük alt kültürlerde ilaçsız kontrole benzer yeniden büyüme ile diğer antibiyotik muadillerinden daha iyi iyileşebildi (Şekil 3B) . 7 günlük bir alt kültürden sonra Stevia A ile tedavi edilen numuneler hiçbir yeniden büyüme belirtisi göstermedi ve 14 günlük bir alt kültürden sonra canlı hücrelerin sadece %1'i gözlendi (Şekil 3B) .

          İçinde Şekil 3B, 7 günlük ve 14 günlük bir alt kültürden sonra doğrudan sayım yönteminde doksisiklin ve üç antibiyotik kombinasyonunun etkinliği Stevia A ile karşılaştırıldı . Borrelia'nın yeniden büyümesinde önemli azalma ( p değeri ≤ 0.01) bulundu 14 günlük bir alt kültürden sonra doksisiklin ile karşılaştırıldığında Stevia A ile. Stevia A , plastik ve kollajen yüzeylerde büyütülen Borrelia biyofilmlerini önemli ölçüde azalttı

          B. burgdorferi'nin çoklu morfolojik biçimlerinin , yani spiroketal biçim, yuvarlak gövdeler ve biyofilmlerin farklı antimikrobiyal duyarlılıklara sahip olduğu gözlenmiştir [ 7 ]. Önceki yayınımızda, B. burgdorferi'nin biyofilm formunun antibiyotik duyarlılığını karakterize ettik ve bunun en dirençli form olduğunu bulduk [ 7 ]. Bu çalışmada, plastik ve kollajen yüzeylerde büyütülen Borrelia biyofilmleri üzerindeki antimikrobiyal ajanların etkisini değerlendirmek için , farklı antimikrobiyal ajanların etkinliğini ölçmek için antimikrobiyal ile muamele edilmiş biyofilmleri kristal menekşe ile boyadık.

          Plastik yüzey üzerinde büyütülen ve negatif kontroller, 1 × PBS veya %25 alkol ile işleme tabi tutulan biyofilmler, işlenmemiş biyofilm kontrolüne kıyasla biyofilm kütlelerinde azalma göstermedi (4) . Doksisiklin, sefoperazon, daptomisin ve üçlü antibiyotik kombinasyonu ile tedavi edilen biyofilmler, ilaçsız kontrole kıyasla Borrelia biyofilm kütlesinde önemli artış gösterdi (4) . Bununla birlikte Stevia A ile muamele , plastik üzerindeki Borrelia biyofilmlerini kontrole kıyasla ~%40 oranında önemli ölçüde azalttı (4).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı eujmi-05-268-g004.jpg
          4.
          Plastik ve kolajen kaplı yüzey üzerinde büyütülen Borrelia burgdorferi biyofilmlerinin kristal mor tahlili ile belirlenen üç günlük bir tedaviden sonra antimikrobiyal ajanlara duyarlılığı . Pozitif kontrol olarak doksisiklin (DoxC) kullanıldı. Negatif kontroller olarak sırasıyla 1 x PBS ve %25 alkol kullanıldı. Tüm antibiyotikler tek tek ve kombinasyon halinde 10 ug/ml'lik bir konsantrasyonda kullanıldı. Stevia A, 1.2 ug/ml'lik bir konsantrasyonda kullanıldı. n = 3 ± SD, * p ≤ 0.05, ** p ≤ 0.01 kontrol ile karşılaştırıldığında. n = 3 ± SD, + p ≤ 0.05, ++ p ≤0.01 (Stevia A ile karşılaştırıldığında doksisiklin). n = 3 ± SD, • p ≤ 0.05, •• p ≤ 0.01 (Stevia A ile karşılaştırıldığında doksisiklin). Kısaltmalar: doksisiklin – DoxC, sefoperazon – CefP, daptomisin – DapM

          Kollajen kaplı yüzey üzerinde büyütülen biyofilmler, negatif kontrol, 1 × PBS veya %25 alkol ile tedavinin, kontrole kıyasla biyofilm kütlelerinde azalma göstermediğini göstermektedir (4). Doksisiklin ve daptomisin ile yapılan tedavilerin Borrelia biyofilm kütlesi üzerinde anlamlı bir etkisi olmamıştır (4). Sefoperazon ile tedavi edildiğinde kolajen üzerinde büyüyen Borrelia biyofilmlerinde bir artış oldu ve aksine, kontrole kıyasla üçlü antibiyotik kombinasyonu ile tedavi edildiğinde bu biyofilmlerde %10'luk bir azalma gözlemlendi (4). Ek olarak, Stevia A ile tedavi edilen biyofilmler ayrıca, kontrole kıyasla kollajen üzerinde ~%34 oranında önemli bir azalma gösterdi (4). Stevia A'ya karşı doksisiklin ve üç antibiyotik kombinasyonunun etkinliğini değerlendirmek için, sonuçlar4Stevia A tarafından plastik ve kollajen yüzeylerde büyütülen toplam Borrelia biyokütlesinde doksisiklin ve üç antibiyotik kombinasyonuna kıyasla önemli bir azalma olduğunu gösterdi (p değeri ≤ 0.01). Stevia A, bağlı Borrelia biyofilmlerinde canlılığı azaltır

          Antimikrobiyal işlemden sonra bağlı biyofilmlerin canlılığını doğrudan gözlemlemek için, işlenmiş biyofilmleri bir SYBR Green I ve propidium iyodür karışımı (canlı/ölü lekeler) kullanarak boyadık. Borrelia 1 x PBS ve% 25 alkol ile muamele biyofilm çoğunlukla (biyofilm canlı olduğunu gösteren yeşil boyama, büyük ve küçük olduğuŞekil 5: paneller ii ve iii). Sefoperazon ile tedavi edilen biyofilmler, doksisiklin ile tedavi edilen biyofilmlere kıyasla önemli ölçüde daha küçüktü ve her ikisi de canlı olduklarını gösteren küçük kırmızı noktalarla yeşildi (Şekil 5: paneller iv ve v). Daptomisin ile muamele edilen biyofilmler büyük ve kompakttı ve çoğunlukla canlı hücrelerle yeşil boyandı (Şekil 5: panel vi), antibiyotik kombinasyonu ile tedavi edilen biyofilmler, canlı hücrelerin baskın olduğu canlı ve ölü hücrelerin bir karışımından oluşuyordu (Şekil 5: panel vii). Stevia A ile Borrelia biyofilm tedavisi, biyofilmin esas olarak ölü spiroketlere ve yuvarlak gövdelere sahip olduğunu gösteren, ağırlıklı olarak kırmızı lekeli (Şekil 5: panel viii). Stevia A ile tedavi edilen biyofilmin morfolojisi, antibiyotiklerle tedavi edilen biyofilmlere kıyasla küçük ve gevşek bir şekilde paketlenmiştir (Şekil 5: panel viii).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı eujmi-05-268-g005.jpg
          Şekil 5.
          Farklı antimikrobiyal ajanlarla muamele edilmiş Borrelia biyofilmlerinin temsili canlı/ölü görüntüleri, ardından 200x büyütmede alınan SYBR Green I ve PI boya karışımı ile boyama. Pozitif kontrol olarak doksisiklin (DoxC) kullanıldı. Negatif kontroller olarak sırasıyla 1 x steril PBS ve %25 alkol kullanıldı. Tüm antibiyotikler tek tek ve kombinasyon halinde 10 µg/ml konsantrasyonda kullanıldı. Stevia A, 1.2 µg/ml konsantrasyonda kullanıldı. Ölçek çubuğu –100 μm. Kısaltmalar: doksisiklin – DoxC, sefoperazon – CefP, daptomisin – DapM AFM analizi, Stevia A ile tedavi edilen biyofilmlerde gevşek morfoloji gösterir.

          Gelişmiş görselleştirme için dijital olarak renklendirilen ve 3 boyutlu oluşturulan atomik kuvvet mikroskobik görüntüler, antimikrobiyal ajanlarla tedaviden önce ve sonra biyofilmlerdeki ultra yapısal özellikleri gösterir. Kırmızı renk, biyofilmlerdeki en yüksek tepe noktasını gösterir, bu da esas olarak biyofilm EPS matrisinin potansiyel varlığını gösterir. İlaçsız kontrol, kayda değer EPS birikimi ile çok kompakt ve sert bir yapıya sahipti (Şekil 6: panel i). Doksisiklin, sefoperazon, daptomisin ve üçlü antibiyotik kombinasyonu ile muamele edilen biyofilmler, daha fazla potansiyel EPS katmanına sahip kompakt yapıya sahip kontrole benzerdi.Şekil 6: paneller ii–v). İlginç bir şekilde, Stevia ile muamele edilmiş biyofilmler çok gevşek bir yapıya sahiptir ve EPS tabakası neredeyse oluşmamıştır (Şekil 6: panel vi).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı eujmi-05-268-g006.jpg
          Şekil 6.
          Antimikrobiyal ajanlarla tedaviden önce ve sonra Borrelia biyofilminin ultrastrüktürel ayrıntılarını gösteren temsili atomik kuvvet mikroskobu görüntüleri . B. burgdorferi suşu B31 biyofilmlerinin oda slaytları üzerindeki hazırlıkları Malzemeler ve yöntemler bölümünde anlatılmıştır. Tüm biyofilmler, temas modu kullanılarak 0.4 Hz'de tarandı ve ayrı Z aralıkları (yükseklik), bir ölçek vasıtasıyla her panelin yanında belirtilmiştir. Görüntüler Nanosurf Easyscan 2 yazılımı kullanılarak tarandı ve görüntüler Gwyddion yazılımı kullanılarak işlendi. Tüm antibiyotikler tek tek ve kombinasyon halinde 10 µg/ml konsantrasyonda kullanıldı. Stevia A, 1.2 µg/ml konsantrasyonda kullanıldı. Kısaltmalar: doksisiklin – DoxC, sefoperazon – CefP, Daptomisin – DapM

          Git: Tartışma

          Bu çalışmada, Lyme hastalığına neden olan patojen B. burgdorferi'ye karşı bütün yaprak Stevia ekstraktlarının antimikrobiyal potansiyelini değerlendirdik . Stevia'nın antimikrobiyal etkisini antibiyotiklerle (doksisiklin, sefoperazon, daptomisin) ve yakın zamanda Borrelia ısrarcılarına karşı etkili bulunan kombinasyonlarıyla karşılaştırdık [ 31 ] . Bu çalışma için, J. Feng ve diğerleri tarafından geliştirilen yeni bir nicel yöntemi kullanmayı seçtik. daha önce bildirdiğimiz doğrudan sayma yöntemimizle birlikte [ 7 , 30 , 31 , 46]. Bu çalışmadan elde edilen bulgular, tek bir ajan olarak Stevia bütün yaprak özütünün, B. burgdorferi'nin bilinen tüm morfolojik formlarına karşı etkili olduğunu göstermektedir .

          Farklı Stevia özleri kullanılarak yapılan ön tarama deneyinde, Stevia'nın (Stevia A, Stevia B ve Stevia C) alkol özlerinin Borrelia kalıcıları üzerindeki etkinliğinde Stevia'nın toz formuna (Stevia D) kıyasla önemli bir değişiklik gösterdik. ve herhangi bir etki göstermeyen saflaştırılmış Stevioside (1) . Ayrıca Stevia bileşiklerinden biri olan Stevia A'nın diğer Stevia ekstraktlarına kıyasla Borrelia kalıcılarını önemli ölçüde ortadan kaldırdığını bulduk (1) . Bu, farklı Stevia ekstraktlarının farklı fitokimyasal konsantrasyonlarında gözlemlenen, yetiştirme koşulları ve takip edilen tarımsal uygulamalardan kaynaklanan bildirilen varyasyonlarla açıklanabilir [ 47 , 48 ]. Stevia A, Borrelia kalıcılarını ortadan kaldırmada etkili olduğundan, B. burgdorferi'nin farklı morfolojik formları üzerindeki etkinliğini daha fazla araştırmak için Stevia A seçildi .

          Sonraki deney setinde, Stevia A'nın etkinliğini antibiyotikler ve J. Feng ve diğerleri tarafından yakın tarihli raporlarda etkili bulunan üç antibiyotik kombinasyonları ile karşılaştırdık, [ 31 ] önce Borrelia spiroketlerine ve ardından kantitatif yöntemi kullanan ısrarcılara. J. Feng ve diğerleri tarafından geliştirilen yöntem. ve E. Sapi ve ark. Stevia A'nın daha düşük bir konsantrasyonda (1.2 μg/ml) bile , SYBR Green I/PI yöntemini kullanarak erken log fazı ve sabit B. burgdorferi kültürlerinin canlılığını önemli ölçüde ortadan kaldırabildiğini gözlemledik (Şekil 2A, ve ​2C2C: paneller viii ve xvi) doğrudan sayma yöntemi kullanılarak da doğrulanmıştır (Şekil 2B, ve ​2C2C: paneller viii ve xvi). J. Feng ve ark. (2015), daptomisin ve sefoperazon, Borrelia kalıcılarına karşı etkili olmasına rağmen , B. burgdorferi'nin mikrokoloni formunu tamamen ortadan kaldıramadı [ 30 ]. Ayrıca önceki in vivo ve in vitro çalışmalardan da doksisiklinin spiroketleri ortadan kaldırmada etkili olduğu, ancak Borrelia'nın kalıcılarını etkilemediği gözlemlendi [ 7 , 16 , 17 , 30 , 31]. Ancak, J. Feng ve ark. ayrıca üç antibiyotik kombinasyonunun (doksisiklin, sefoperazon ve daptomisin) Borrelia'nın durağan fazdan zengin kalıcılarını ortadan kaldırmada çok güçlü olduğunu gösterdi [ 30 ]. Bu çalışmada, bireysel bir ajan olarak Stevia A'nın bildirilen üç ilaçlı kombinasyon tedavisine benzer şekilde spiroketleri ve Borrelia'nın kalıcılarını ortadan kaldırabildiğine dair kanıt sağladık . Verilerimiz ayrıca, Borrelia'nın persistanları üzerindeki kombinasyon halindeki antibiyotiklerin gerçekten önceki çalışma ile tutarlı olduğunu gösterdi [ 30 ]; bu sonuç, Stevia A'nın etkinliğini daha da doğrulamaktadır.

          Daha önceki çalışmalarımızda, B. burgdorferi'nin biyofilm formunu in vitro olarak karakterize ettik ve bunun antibiyotiğe en dirençli formu temsil ettiğini gösterdik [ 24 ]. Ayrıca bir yüzeye yapışan biyofilmlerin antibiyotiklerden veya diğer antimikrobiyal ajanlardan korunduğu bildirilmektedir [ 28 , 29 ]. Bu çalışmada ayrıca tüm antimikrobiyal ajanların bağlı Borrelia biyofilmleri üzerindeki etkisini de değerlendirdik . Sonuçlarımız Stevia A'nın hem plastik hem de kolajen kaplı yüzeylerde bağlı Borrelia biyofilm kütlesini ~%40 oranında azaltmada çok etkili olduğunu gösterdi (4) bireysel antibiyotikler aslında biyofilm kütlesinin boyutunu indüklerken (4) .

          Bazı antibiyotiklerin gerçekten de bakteriyel biyofilm oluşumunu destekleyebildiği daha önce bildirilmişti [ 49 ]. Potansiyel bir açıklama, biyofilmlerdeki hücrelerin, zayıf antibiyotik penetrasyonu, biyofilmde oluşan hücrelerin fenotipik değişiklikleri, akış pompalarının ekspresyonu gibi çeşitli savunma mekanizmaları geliştirerek kendilerini olumsuz antibiyotik ortamından koruyabilmeleridir [ 24 , 28 ]. antimikrobiyal ajanlara maruz kaldığında ölmeye direnen kalıcı hücrelerin varlığı [ 28 , 29 ]. Kalıcı hücreler, normal hücre popülasyonu arasında bulunan yüksek dirençli hücrelerin bir alt popülasyonudur ve uykuda ve yüksek oranda korunurlar [ 28]]. Çalışmalar, biyofilmlerdeki küçük hücre fraksiyonlarının uzun süreli antibiyotik tedavisinden sonra etkilenmediğini göstermektedir [ 29 , 53 ].

          Stevia'nın oldukça dirençli Borrelia biyofilmini nasıl etkileyebileceği konusundaki bariz soru, daha fazla araştırmayı garanti ediyor. Bir şeker alkolü kullanan bir çalışmada, ksilitolün ağız boşluğunda biyofilm oluşumunu bozarak plak önleyici bir ajan olarak etki ettiği bildirilmiştir [ 54 ]. Başka bir çalışmada, ksilitolün Streptococcus mutans'ın yapışkan polisakkaritlerinin üretimini etkilediğini gösterdiler [ 55 ]. Şekerlerin Staphylococcus aureus ve Escherichia coli'de antibiyotik alımını hızlandırdığı daha önce gösterilmişti [ 56]]. Bu önceki bulgulara dayanarak, Stevia'nın antimikrobiyal etkiden sorumlu fitokimyasalların alımını başlatabilecek ve böylece biyofilm yapısını bozabilecek bir şeker türevi olarak hareket edebileceğini varsayıyoruz. Hipotezimizi desteklemek için, Stevia A ile muamele edilmiş biyofilmin üst yapısının, doksisiklin, sefoperazon, daptomisin ve antibiyotik kombinasyonu ile muamele edilmiş biyofilmlerin kompakt yapısına kıyasla büyük sığ çukurlarla çok gevşek morfolojiye sahip olduğunu da gösterdik (Şekil 6: paneller ii–vi).

          Stevia'nın etkinliğini daha da doğrulamak için, 7 gün sonra canlı hücrelerin yeniden büyüyüp büyüyemeyeceğini gözlemlemek için tedavi edilen hücrelerin bir popülasyonunu taze kültür ortamına aktararak , antimikrobiyal işleme tabi tutulmuş , Borrelia kalıcılarının baskın olduğu durağan fazı kullanarak uzun vadeli alt kültür deneyleri gerçekleştirdik. ve antimikrobiyal ajanın yokluğunda 14 günlük bir süre. Doğal antimikrobiyal ajanın (Stevia A), 7 günlük bir alt kültürden sonra canlı hücrelerin yeniden büyümesi olmadan ve 14 günlük bir alt kültürden sonra canlı hücrelerde sadece %10 artışla etkili olduğu gösterildi. Üçlü antibiyotik kombinasyonunun etkileri, Stevia A ile karşılaştırıldığında, SYBR Green I/PI yöntemi kullanılarak saptandığı ve floresan mikroskopi ile doğrulandığı gibi canlı hücrelerin %5 ve %11'i ile yeniden canlandı (Şekil 3A, ve ​3B3B: paneller vii, viii, xv ve xvi). Ayrıca Borrelia'nın kalıcılara karşı önemli bir etki göstermeyen doksisiklin ve sefoperazon ile tedavi edildiğini gözlemledik (Şekil 2A, ​,2B2Bve 2C: xii ve xiii panelleri), 7 günlük bir alt kültürden sonra sadece %13 ve %6 canlı hücrelerle geri kazanma (Şekil 3A, ve ​3C3C: paneller iv ve v). Bu fenomen için olası bir açıklama, bakteriler uygun koşullar altında bir biyofilmden dağıldığında antibiyotik duyarlılığının geri kazanılmış olabileceği olabilir [ 28 ].

          Stevia yaprağı özütü, yaygın olarak kullanılan bir şeker ikamesidir [ 39–41 , 57 ]; bununla birlikte, son araştırmalar, başlıca glikozitlerden biri olan steviosidin Bacillus cereus, Bacillus subtilis, Klebsiella pneumoniae ve Pseudomonas aeruginosa'ya karşı antimikrobiyal etkiye sahip olabileceğini göstermektedir [ 42 ]. Bu antimikrobiyal çalışmalarda yüksek konsantrasyonda saflaştırılmış stevioside kullanılmıştır ve çalışmamızda, daha düşük bir tam yaprak özü konsantrasyonu kullanarak Borrelia'ya karşı benzer antimikrobiyal etki elde ettik . Saflaştırılmış Stevioside içeren verilerimiz, Stevia'nın bütün yaprak özlerine kıyasla Borrelia spiroketleri ve kalıcıları üzerinde önemli bir antimikrobiyal etki göstermedi .(1) . Bu bulgu, Stevia tam yaprak özütü içindeki diğer bileşenlerin B. burgdorferi'ye karşı antimikrobiyal aktiviteye sahip olabileceğini ve gelecekteki çalışmalarda henüz tanımlanamayacağını göstermektedir. Bulgularımızla iyi bir uyum içinde, Stevia yaprağı ekstresi ayrıca E. coli, S. aureus, Vibrio mimicus, Salmonella typhimurium, S. mutans, Bacillus subtilis, Shigella dysenteriae ve Vibrio cholera gibi patojenlere karşı antimikrobiyal aktivite göstermiştir [ 38– 42 ]. Bir sonraki soru, Stevia'nın terapötik bir ajan olarak güvenle kullanılıp kullanılamayacağıdır. Toksikolojik çalışmalar, Stevia'nın mutajenik, teratojenik veya kanserojen etkileri olmadığını göstermiştir [ 57]] ve son çalışmalar, yüksek diyet alım seviyelerinde güvenliğini göstermiştir [ 57-59 ]. Stevioside ve Steviol'ün mutajenitesini inceleyen bir çalışmada, 10 mg/ml'deki Stevioside'ın S. typhimurium'da herhangi bir mutasyonu indüklemediği kaydedilmiştir [ 60 ]. Bu çalışmaların dışında Stevia'da bulunan glikoproteinlere dayalı iki önemli klinik çalışma bulunmaktadır. Hafif hipertansiyon yaşayan Çinli erkek ve kadınlar üzerinde yapılan randomize, çift kör bir çalışmada, glikoprotein steviosidin plaseboya kıyasla sistolik ve diyastolik kan basıncını düşürdüğü ve ayrıca herhangi bir yan etkiye neden olmadan yaşam kalitesini iyileştirdiği bildirilmiştir [ 44].]. Başka bir çalışmada, tip 2 diyabetli hastalarda steviosidin akut etkileri analiz edildi [ 45 ]. Kontrol grubuyla karşılaştırıldığında, steviosid, tip 2 diyabetik hastalarda tokluk kan şekeri düzeylerini düşürür [ 45 ]. Bu çalışmaların her ikisinde de, steviosid'in kapsüllenmiş toz formunun ve ağızdan alınan tam yaprak özütünün kullanıldığı kaydedildi [ 44 , 45 ]. Ayrıca klinik çalışmalardan birinde, %91 steviosid, %4 rebaudiosit A ​​ve %5 stevio tarafının diğer türevlerini içeren bir bütün yaprak preparasyonu kullanıldığı gözlemlenmiştir [ 45 ]. Bu klinik çalışmalardan elde edilen sonuçlar, hastaların steviosid kullanımından kaynaklanan herhangi bir yan etkiyle karşılaşmadığını göstermektedir [ 44 ,45 ]. Stevia'nın güvenliği geniş çapta çalışılmış olsa da, Stevia'nın herhangi bir bulaşıcı hastalık için bir antimikrobiyal ajan olarak kullanılabilmesi için daha fazla in vivo çalışma yapılması garanti edilmektedir.

          Gelecekteki hedefimiz, B. burgdorferi'ye karşı bütün yaprak Stevia ekstraktının bireysel bileşenlerini daha fazla araştırmak ve önemli antimikrobiyal etkisinden sorumlu en etkili bileşeni belirlemektir. Sonuç olarak, Stevia A özütünün B. burgdorferi'nin farklı morfolojik formları üzerindeki genel antimikrobiyal etkinliği , belirli antibiyotiklerin kombinasyonu ile karşılaştırılabilirdi. Bu ön çalışmanın sonuçları doğrudan klinik uygulamaya yansıtılamasa da, Stevia'nın güvenliliğini ele alabilecek ve Borrelia'ya karşı en etkili bileşen(ler)i daha fazla tanımlayabilecek daha ileri takip çalışmaları gereklidir .

          Git: Teşekkür

          Yazarlar, değerli girdileri ve makaleyi incelemesi için Arun Timmaraju MS'ye teşekkür eder. Bu çalışma, New Haven Üniversitesi, Joshua Araştırma Vakfı, Tom Crawford's Leadership Children Foundation, National Philanthropic Trust, Alyssa Wartman Funds to ES ve NH Charitable Foundation'dan PAST ve KMS'ye lisansüstü burslarla desteklenmiştir. Ayrıca Lymedisease'e teşekkür ederiz. org, Atomik Kuvvet ve Leica DM2500 mikroskoplarının yanı sıra Hamamatsu ORCA Dijital Kamera bağışı için Schwartz Araştırma Vakfı ve AFM'yi destekleyen bilgisayar için Global Lyme Alliance'a.

          Git: Dipnotlar


          Kısaltmalar: ATCC – Amerikan tipi kültür koleksiyonu; BSK-H – Barbour–Stoner–Kelly H; CefP – sefoperazon; DapM – daptomisin; DoxC – doksisiklin; EPS – hücre dışı polimerik maddeler; Log aşaması – logaritmik aşama; PBS – fosfat tamponlu salin; PI – propidyum iyodür; PTLDS – tedavi sonrası Lyme hastalığı sendromu


          Git: Referanslar

          1. Radolf JD, Caimano MJ, Stevenson B, Hu LT: Keneler, fareler ve erkekler hakkında: Lyme hastalığı spiroketlerinin çift konukçu yaşam tarzını anlamak . Nat Rev Microbiol 10 , 87–99 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          2. Stricker RB, Johnson L: Lyme hastalığı: Önümüzdeki on yıl . Infect Drug Resist 4 , 1-9 (2011) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          3. CDC [İnternet]. Lyme Dis web sitesi 2014. [2015 9 Haziran'da alıntılandı]; Şu adresten edinilebilir: http://www.cdc.gov/lyme/ststs/index.html
          4. Donta ST: Kronik Lyme hastalığı için tetrasiklin tedavisi . Clin Infect Dis 25 ( Ek 1 ), S52–S56 (1997) [ PubMed ] [ Google Akademik ]
          5. Massarotti EM Luger SW Rahn DW Messner RP Wong JB Johnson RC et al. .: Erken Lyme hastalığının tedavisi . Am J Med 92 , 396-403 (1992) [ PubMed ] [ Google Akademik ]
          6. Dattwyler RJ, Volkman DJ, Conaty SM, Platkin SP, Luft BJ: Eritema migrans borreliosis tedavisi için amoksisilin artı probenesid ve doksisiklin . Lancet 336 , 1404–1406 (1990) [ PubMed ] [ Google Akademik ]
          7. Sapi E Kaur N Anyanwu S Luecke DF Datar A Patel S et al. .: Borrelia burgdorferi'nin farklı morfolojik formlarının in vitro antibiyotik duyarlılıklarının değerlendirilmesi . Infect Drug Resist 4 , 97–113 (2011) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          8. Eppes SC, Childs JA: Erken Lyme hastalığı olan çocuklarda sefuroksim aksetil ile amoksisilin karşılaştırmalı çalışması . Pediatri 109 , 1173–1177 (2002) [ PubMed ] [ Google Akademik ]
          9. Hastalık Kontrol ve Önleme Merkezleri (PTLDS) [İnternet]. Lyme Dis web sitesi 2014. [Kaynak 2015 8 Haziran]; Şu adresten edinilebilir: http://www.cdc.gov/lyme/postlds/index.html
          10. Berndtson K: Lyme hastalığında bağışıklık kaçırma ve kalıcı enfeksiyon için kanıtların gözden geçirilmesi . Int J Gen Med 6 , 291–306 (2013) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          11. Bockenstedt LK, Gonzalez DG, Haberman AM, Belperron AA: Spiroket antijenleri, murin Lyme borreliosis tedavisinden sonra kıkırdak yakınında kalıyor . J Clin Invest 122 , 2652–2660 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          12. Hodzic E, Feng S, Holden K, Freet KJ, Barthold SW: Farelerde antibiyotik tedavisini takiben Borrelia burgdorferi'nin kalıcılığı . Antimicrob Agents Chemother 52 , 1728–1736 (2008) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          13. Diterich I, Rauter C, Kirschning CJ, Hartung T: Bağışıklık baskılama yoluyla kalıcılığın bir modeli olarak Borrelia burgdorferi kaynaklı tolerans Bağışıklık baskılayıcı yoluyla kalıcılığın bir modeli olarak Borrelia burgdorferi kaynaklı tolerans . Infect Immun 71 , 3979–3987 (2003) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          14. Hodzic E, Imai D, Feng S, Barthold SW: Farelerde antibiyotik tedavisini takiben Persisting ekilemeyen Borrelia burgdorferi'nin Yeniden Dirilişi . PLoS One 23 , 1–11 (2014) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          15. Barthold SW, Hodzic E, Imai DM, Feng S, Yang X, Luft BJ: Kalıcı Borrelia burgdorferi'ye karşı tigesiklinin etkisizliği . Antimicrob Agents Chemother 54 , 643–651 (2010) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          16. Straubinger RK, Summers BA, Chang YF, Appel MJG: Antibiyotik tedavisinden sonra deneysel olarak enfekte olmuş köpeklerde Borrelia burgdorferi'nin kalıcılığı . J Clin Microbiol 35 , 111–116 (1997) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          17. Köz ME Bartholdk GB Borda JT Bowers L Doyle L Hodzic E et al. .: Yaygın enfeksiyonun antibiyotik tedavisini takiben rhesus makaklarında borrelia burgdorferi'nin kalıcılığı . PLoS One 7 , 1–12 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          18. Marques A Telford SR Türk SP Chung E Williams C Dardick K et al. .: Borrelia burgdorferi enfeksiyonunu saptamak için Xenodiagnosis : insanda ilk çalışma . Clin Infect Dis 58 , 937–945 (2014) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          19. Klempner MS Baker PJ Shapiro ED Marques A Dattwyler RJ Halperin JJ et al. .: Lyme sonrası hastalık semptomlarına yönelik tedavi denemeleri yeniden gözden geçirildi . Am J Med 126 , 665–669 (2013) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          20. Fallon BA Keilp JG Corbera KM Petkova E Britton CB Dwyer E et al. .: Lyme ensefalopatisi için tekrarlanan IV antibiyotik tedavisinin randomize, plasebo kontrollü bir denemesi . Nöroloji 70 , 992–1003 (2008) [ PubMed ] [ Google Akademik ]
          21. Krupp LB Hyman LG Grimson R Coyle PK Melville P Ahnn S et al. .: Lyme hastalığı sonrası çalışma ve tedavisi (STOP-LD): randomize, çift maskeli bir klinik çalışma . Nöroloji 60 , 1923–1930 (2003) [ PubMed ] [ Google Akademik ]
          22. Brorson Ø, Brorson SH, Scythes J, MacAllister J, Wier A, Margulis L: Spiroket Borrelia burgdorferi yuvarlak gövdeli propagüllerinin (RB'ler) antibiyotik tigesiklin tarafından yok edilmesi . Proc Natl Acad Sci USA 106 , 18656–18661 (2009) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          23. Miklossy J, Kasas S, Zurn AD, McCall S, Yu S, McGeer PL: Borrelia burgdorferi'nin kalıcı atipik ve kistik formları ve Lyme neuroborreliosis'te lokal inflamasyon . J Neuroinflammation 5 , 1–18 (2008) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          24. Sapi E Bastian SL Mpoy CM Scott S Rattelle A Pabbati N et al. .: Borrelia burgdorferi tarafından in vitro biyofilm oluşumunun karakterizasyonu . PLoS One 7 , 1–11 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          25. Alban PS, Johnson PW, Nelson DR: Borrelia burgdorferi'nin protein sentezi ve morfolojisinde serum açlığına bağlı değişiklikler . Mikrobiyoloji 146 , 119–127 (2000) [ PubMed ] [ Google Akademik ]
          26. Brorson O, Brorson SH: Borrelia burgdorferi'nin omurilik sıvısında kistik formlara in vitro dönüşümü ve BSK-H ortamında inkübasyon yoluyla mobil spiroketlere dönüşümü . Enfeksiyon 26 , 144–150 (1998) [ PubMed ] [ Google Akademik ]
          27. Vlamakis H, Chai Y, Beauregard P, Losick R, Kolter R: Birbirine yapışmak: Bacillus subtilis yolu ile bir biyofilm oluşturmak . Nat Rev Microbiol 11 , 157–168 (2013) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          28. Stewart Not: Bakteriyel biyofilmlerde antibiyotik direnci mekanizmaları . Int J Med Microbiol 292 , 107–113 (2002) [ PubMed ] [ Google Akademik ]
          29. Mah TF: Biyofilm mikrokolonilerinde antibiyotik toleransının düzenlenmesi . J Bacteriol 194 , 4791–4792 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          30. Feng J, Auwaerter PG, Zhang Y: Borrelia burgdorferi ısrarcılarına karşı in vitro ilaç kombinasyonları: daptomisin, sefoperazon ve doksisiklin kullanılarak elde edilen eradikasyon . PLoS One 10 , 1–15 (2015) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          31. Feng J Wang T Shi W Zhang S Sullivan D Auwaerter PG ve ark. .: FDA onaylı bir ilaç kütüphanesi kullanılarak Borrelia burgdorferi ısrarcılarına karşı yeni aktivitenin belirlenmesi . Emerg Microbes Infect 3 , 1–8 (2014) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          32. Cowan MM: Antimikrobiyal ajanlar olarak bitki ürünleri . Clin Microbiol Rev 12 , 564-582 (1999) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          33. Datar A, Kaur N, Patel S, Luecke DF, Sapi E: Samento ve banderol bitki özlerinin Borrelia burgdorferi'nin farklı morfolojik formları üzerindeki in vitro etkinliği . Townsend Lett (2010) [ Google Akademik ]
          34. Osman K Evangelopoulos D Basavannacharya C Gupta A McHugh TD Bhakta S et al. .: Hypericum acmosepalum kaynaklı anantibakteriyel, Mycobacterium tuberculosis kaynaklı ATP-bağımlı MurE ligazını inhibe eder . Int J Antimicrob Agents 39 , 124–129 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          35. Zuo GY An J Han J Zhang YL Wang GC Hao XY et al. .: Çin bitkisi Hypericum japonicum'dan Isojacareubin: klinik metisiline dirençli Staphylococcus aureus (MRSA) üzerinde güçlü antibakteriyel ve sinerjik etkiler . Int J Mol Sci 13 , 8210–8218 (2012) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          36. Wangchuk P Keller PA Pyne SG Taweechotipatr M Tonsomboon A Rattanajak R et al. .: Etnofarmakolojik olarak seçilmiş bir Bhutan şifalı bitkisinin ana fitokimyasal sınıfları ve biyolojik aktiviteleri açısından değerlendirilmesi . J Ethnopharmacol 137 , 730–742 (2011) [ PubMed ] [ Google Akademik ]
          37. Lyme hastalığı olan hastalarda doğal antimikrobiyal ajanların kullanıldığı klinik çalışmalar [İnternet] 2007 [aktarılan 2015 Haziran 9]; Şuradan erişilebilir: http://www.nutramedix.ec/ns/lyme-protocol .
          38. Ghosh S, Subudhi E, Nayak S: Stevia rebaudiana Bertoni yaprak ekstraktlarının 10 patojen bitki materyaline ve mikroorganizmalara karşı antimikrobiyal tahlili Minimum inhibitör konsantrasyonunun (MIC) belirlenmesi . Int J Bütünleştirici Biyoloji 2 , 27–31 (2008) [ Google Akademik ]
          39. Mohammadi-Sichani M: Stevia rebaudiana yapraklarının farklı ekstraktlarının Streptococcus mutans büyümesi üzerindeki etkisi . J Med Plants Res 6 , 4731–4734 (2012) [ Google Akademik ]
          40. Jayaraman S, Manoharan MS: Stevia rebaudiana (Asteraceae) Yaprak Ekstraktlarının in vitro antimikrobiyal ve antitümör aktiviteleri 7 , 1143–1149 (2008) [ Google Akademik ]
          41. Siddique AB, Rahman SMM, Hossain MA, Rashid MA: Stevia rebaudiana Bertoni yapraklarının farklı ekstraktlarının fitokimyasal tarama ve karşılaştırmalı antimikrobiyal potansiyeli . Asya Pasifik J Trop Dis 4 , 275–280 (2014) [ Google Akademik ]
          42. Puri M, Sharma D: Steviosidin gıda kaynaklı patojenik bakterilere karşı antibakteriyel aktivitesi . Müh Life Sci 11 , 326–329 (2011) [ Google Akademik ]
          43. Khaybullin RN Strobykina IY Dobrynin AB Gubaydullin AT Chestnova RV. Babaev VM ve ark. .: Ent-kaurane steviolün yeni katlanmamış ve makrosiklik türevlerinin sentezi ve antitüberküloz aktivitesi . Bioorganic Med Chem Lett 22 , 6909–6913 (2012) [ PubMed ] [ Google Akademik ]
          44. Hsieh MH Chan P Sue YM Liu JC Liang TH Huang TY et al. .: Hafif esansiyel hipertansiyonu olan hastalarda oral steviosidin etkinliği ve tolere edilebilirliği: iki yıllık, randomize, plasebo kontrollü bir çalışma . Clin Ther 25 , 2797–2808 (2003) [ PubMed ] [ Google Akademik ]
          45. Gregersen S, Jeppesen PB, Holst JJ, Hermansen K: Tip 2 diyabetik deneklerde steviosidin anti-hiperglisemik etkileri . Metabolizma 53 , 73–76 (2004) [ PubMed ] [ Google Akademik ]
          46. Feng J, Wang T, Zhang S, Shi W, Zhang Y: Borrelia burgdorferi için hızlı canlılık değerlendirmesi ve antibiyotik duyarlılık testi için Optimize Edilmiş SYBR Green I/PI testi . PLoS One 9 , 1–8 (2014) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          47. Serfaty M, Ibdah M, Fischer R, Chaimovitsh D, Saranga Y, Dudai N: Farklı ekim zamanları, bitki meşcereleri ve hasat rejimi altında yetiştirilen Stevia rebaudiana'da verim bileşenleri ve steviosid üretiminin dinamikleri . Ind Crops Prod 50 , 731–736 (2013) [ Google Akademik ]
          48. Das K, Dang R, Gupta N: Stevia yapraklarının farklı ekstraktlarının karşılaştırmalı antimikrobiyal potansiyeli . Int J Nat Eng Sci 3 , 65–68 (2009) [ Google Akademik ]
          49. Kaplan JB: Antibiyotik kaynaklı biyofilm oluşumu . Int J Artif Organs 34 , 737–751 (2011) [ PubMed ] [ Google Akademik ]
          50. Oglesby-Sherrouse AG, Djapgne L, Nguyen AT, Vasil AI, Vasil ML: Pseudomonas aeruginosa'nın antimikrobiyal direncini etkileyen demir, biyofilm oluşumu ve mukoidin karmaşık etkileşimi . Pathog Dis 70 , 307–320 (2014) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          51. Ciofu O, Tolker-Nielsen T, Jensen PØ, Wang H, Høiby N: Antimikrobiyal direnç, solunum yolu enfeksiyonları ve akciğer enfeksiyonu sinkistik fibroz hastalarında biyofilmlerin rolü . Adv Drug Deliv Rev 85 , 7–23 (2014) [ PubMed ] [ Google Akademik ]
          52. Iorio NLP Caboclo RF Azevedo MB Barcellos AG Neves FPG Domingues RMCP et al. .: Brezilya, Rio de Janeiro hastanelerinde yaygın metisiline dirençli Staphylococcus epidermidis ST2 ve ST23 soylarının antimikrobiyal direnci ve biyofilm oluşumu ile ilgili özellikler . Diagn Microbiol Infect Dis 72 , 32–40 (2012) [ PubMed ] [ Google Akademik ]
          53. Brooun A, Liu S, Lewis K: Pseudomonas aeruginosa biyofilmlerinde antibiyotik direncinin doz-yanıt çalışması . Antimicrob Agents Chemother 44 , 640–646 (2000) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          54. Nisticò R Piccirilli S Cucchiaroni ML Armogida M Guatteo E Giampà C et al. .: Hidrojen peroksitin in vitro beyin iskemisi modeli üzerindeki nöroprotektif etkisi . Br J Pharmacol 153 , 1022–1029 (2008) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          55. Söderling E, Alaräisänen L, Scheinin A, Mäkinen KK: Ksilitol ve sorbitolün Streptococcus mutans tarafından polisakkarit üretimi ve yapışkan özellikleri üzerindeki etkisi . Caries Res 21 , 109–116 (1987) [ PubMed ] [ Google Akademik ]
          56. Allison KR, Brynildsen MP, Collins JJ: Aminoglikozidler tarafından bakteriyel kalıcıların metabolik etkin yok edilmesi . Nature 473 , 216–220 (2011) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          57. Thomas JE, Glade MJ: Stevia: Bu sadece kalorilerle ilgili değil . Açık Obez J 2 , 101–109 (2010) [ Google Akademik ]
          58. Anton SD Martin CK Han H Coulon S Cefalu WT Geiselman P et al. .: Stevia, aspartam ve sakarozun gıda alımı, tokluk ve tokluk glukoz ve insülin seviyeleri üzerindeki etkileri . Appetite 55 , 37–43 (2010) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          59. Karakostas MC, Curry LL, Boileau a. C, Brusick DJ: Genel Bakış: Yiyecek ve içeceklerde kullanım için doğal olarak oluşan bir steviol glikozit olan rebaudiozit A'nın tarihçesi, teknik işlevi ve güvenliği . Food Chem Toxicol 46 , 1–10 (2008) [ PubMed ] [ Google Akademik ]
          60. Matsui M Matsui K Kawasaki Y Oda Y Noguchi T Kitagawa Y et al. .: Altı in vitro ve bir in vivo mutajenite testi kullanılarak steviosid ve steviolün genotoksisitesinin değerlendirilmesi . Mutajenez 11 , 573–579 (1996) [ PubMed ] [ Google Akademik ]
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7
              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap


              • #8
                Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                Yorum yap


                • #9
                  Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                  Yorum yap


                  • #10
                    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                    Yorum yap


                    • #11
                      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                      Yorum yap


                      • #12
                        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                        Yorum yap


                        • #13
                          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                          Yorum yap


                          • #14
                            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                            Yorum yap


                            • #15


                              <iframe width="640" height="390" src="https://www.youtube.com/embed/eeYvrqgF1w0" frameborder="0" allowfullscreen></iframe>
                              <iframe width="640" height="390" src="https://www.youtube.com/embed/Z9ygTYW7kQs" frameborder="0" allowfullscreen></iframe>
                              <iframe width="640" height="390" src="https://www.youtube.com/embed/gwt5UKCzcCY" frameborder="0" allowfullscreen></iframe>
                              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                              Yorum yap

                              Hazırlanıyor...
                              X