
Boswellia 5-LOX Enzimin aktivitesini frenlemekte ve böylece lökotrin azalmakta ve mikrobik olmayan iltihaplı hastalıklar iyileşmektedir, Boswellia antienfamatur olup hastalıkları kökten ortadan kaldırmaktadır. En önemli özeliği ise kanserli hücreler tarafından DNA'sı tahrip olan hücrelerin DNA'sını yenilemektedir. Boswellia başta Artrit, Ostoartroz, Kron, Ülseratif Kolit, Kolit, Kötü Kolesterol, Trigliserid, Kolon Kanseri, Rahim Kanseri, Beyin Tümörü, Prostat Büyümesi, Gut Hastalığı, Depresyon, Serbest Radikalleri yok edici, Antioksidan, Alzheimer, MS, Beyin ve Omurilikteki İltihaplanmalar, Alerjik Hastalıklar, Doğal Kortizon, Sedef Hastalığı, egzama, Atopik Egzama, Arteroskleroz, Görme ve Duyma Zafiyetine karşı kullanılır ve Bağışıklık Sistemini Güçlendirir.Bütün bu hastalıklarda yardımcı Gıda takviyesi olarak kullanılır.
-
lökotrienler ve lipoksinler
Enflamasyonda mediyatör görevi yapan ve alerjik reaksiyonlarda rol oynayan araşidonik asit metabolizma ürünü bir endojen madde grubu. Moleküler oksijenin araşidonik asit yapısında 5. karbon pozisyonuna girmesini katalize eden 5-lipoksijenaz (5-LO) enzimi ürünü maddelerdir. Prostaglandin ve tromboksanlardan molekül yapılarında merkezi bir halka taşımamaları ile ayrılırlar. Lökotrien (LT) adını almalarının nedeni lökositlerden türediklerinin belirlenmesi ve ilk keşfedilen lökotrienin üç bağlı olmasıdır (aslında çoğu 4 çifte bağ taşır). Bu güne kadar bulunan LT’ler bulunuş sıralarına göre LTA, LTB, LTC, LTD ve LTE olarak adlandırılmışlardır. Her biri moleküllerinde taşıdıkları çifte bağ sayısına göre LTA4, LTB4 şeklinde gösterilirler.
Lökotrien B4 dihidroksi lökotrienlerin esas üyesidir; enflamatuvar olaylarda sisteinil lökotrienler LTC4, LTD4 ve LTE4′e göre bütünüyle farklı bir role sahiptir. LTE4 önceleri anafilaksinin yavaş etki eden maddesi (the slow reacting substance of anaphylaxis, SRS) olarak adlandırılmıştır.
12- ve 15-lipoksijenaz yolakları (12-LO ve 15-LO) da biyolojik bakımdan aktif mediyatörlerin oluşmasına yol açar. Oksijenasyon reaksiyonları ve ara ürünler, 5-lipoksijenaz (5-LO) enzimininkilere benzer. 12-HETE, 12-LO yolağının bir ürünüdür.Lökosit kemotaksisi, makrofaj adhezyonunun kolaylaştırılması, trombosit agregasyonu ve habis hücrelerin metastatik potansiyelinin artırılması da dahil çok değişik enflamatuvar etkilere yol açar. 15-HETE, lökotrienlerin neden olduğu proenflamatuvar olaylara zıt yönde etki gösteren en az iki role sahiptir. Bunlardan ilki, PMN’lerin migrasyon, degranülasyon ve süperoksid üretimini inhibe etmesidir. İkincisi, 5-lipoksijenaz için alternatif bir substrat işlevi görerek lipoksinlerin (lipoksin A4 ve Lipoksin B4) oluşmasına yol açmasıdır.
Tetraen yapısına sahip bu maddelerin lipoksinler olarak adlandırılmalarının nedeni lipoksijenazların etkisiyle oluşmalarıdır. Lipoksinler reseptör aracılı çok sayıdaki biyolojik etkilerden sorumludurlar. Önemli görevlerinden biri enflamasyon olayını sonlandıran biyolojik sinyal işlevi görmeleridir. Böylece, granülositlerin lökotrien aracılı işlevlerini ve düz kas kontraksiyonunu zayıflatırlar. Lipoksinler, lökotrien A4 üzerine 12-LO veya 15-LO’nun etkisiyle de oluşabilirler. Böylece enflamasyona neden olan ve onu sonlandıran mediyatörler aynı sistem içinde kontrol altında görev yaparlar.Yorum yap
-
Boswellia Serrata Nedir?
Boswellia Serrata Nedir? “Hint tütsüsü” olarak da bilinen Boswellia serrata, doğanın en etkili enflamatuar karşıtı bitkilerinden biridir. Tek başına ya da diğer bitkilerle karışım halinde, dahili ve harici olarak romatoid artrit, sırt ağrısı, fibrosit ve osteoartrit tedavilerinde kullanılır. Boswellia ile ilgili klinik deneyler ve hayvan üzerinde yapılan çalışmalar, enflamatuar karşıtı etkisini kanıtlamıştır.
Boswellia’nın en önemli bileşeni olan boswellic asit’in, bitkinin farmakolojik etkisi üzerindeki en önemli katkıyı sağladığı düşünülmektedir. In vitro ve hayvan modelleri çalışmaları, boswallic asitin seçici olarak 5-lipoksigenaz’ı inhibe ederek, anti-enflamatuar, antiartritik ve anti-proliferatif etkilerini gösterir.
Anti-Enflamatuar
Bir çok ümit veren bilimsel kanıt boswellia’nın geleneksel kullanımını desteklemektedir. Laboratuar çalışmalarında Boswellia’dan ayrıştırılan içerikler, anti-enflamatuar etkiler sergilemiştir. Deney hayvanları üzerinde, en az steroid olmayan anti-enflamatuar (NSAID) ilaçlardan İbuprofen (Advil, Nuprin, Motrin) kadar etkili olmuş, ve midede rahatsızlık gibi NSAID’lerin gösterdiği yan etkilerden hiç birini göstermemiştir. Bu, uzun süreler boyunca anti-enflamatuar ilaçlar kullanmak zorunda olan insanlar için önem taşır. Diğer denek hayvanlar üzerindeki çalışmalar, boswellia’nın kandaki trigliserit düzeylerini düşürdüğünü de göstermiştir.
Institute of Pharmacology at the University of Frankfurt araştırmacıları tarafından gerçekleştirilen boswellic asit üzerindeki bir çalışma, boswellianın steroidal ilaçlara bir alternatif olacabileceğini göstermiştir. Almanya, University Tubingen’de yapılan ek bir çalışmada, boswellic asitin lökotrienleri inhibe ettiği görüldü. Lökotrienlerin, kronik enflamatuar hastalık çeşitlerinin devam etmesine yardımcı olduğuna inanılmaktadır.
Klinik bir araştırmada, 260’dan fazla romanoid artrit hastasına boswellik asit verildi. Plaseboya oranla şişme ve ağrıda belirgin azalmalar görüldü, sabah tutukluluğu azalmıştı, hastalar tedavi süresince NSAID almayı bıraktıklarını rapor ettiler, ve hastaların genel sağlık durumları gelişme göstermişti. Araştırmaya katılan hastaların %50-60’ında, boswellic asitin romanoid artrit semptomlarını azaltmakta etkili olduğu tespit edildi.
Dizinde osteoporoz olan 30 hastanın katıldığı bir çift kör çalışmada, araştırmacılar, bosweliayı plasebo ile karşılaştırdılar. 13 katılımcı 8 hafta boyunca, ya boswellia ya da plasebo kullandı, sonraki 8 haftada ise tedavi tersine çevrilerek uygulandı. Sonuçlarda, plaseboya oranla, boswellia ile; diz ağrısı, diz oynaklığı ve yürüme mesafesinde oldukça belirgin gelişmeler görüldü.
Astım
Diğer kontrollü insan üzerindeki çalışmalarda, boswellia’nın muhtemelen kan damarlarını daraltan kimyasalların oluşumlarını bloke ederek bronşial astım süresini azalttığı görülmüştür. Boswellia, astım krizlerinin sayılarını azaltabilir. 6 haftalık, çift kör, plasebo kontrollü bir çalışma, günde 3 kez 300 mg dozundaki boswellia tedavisinin, ritmik astım nöbetlerini azalttığını ve nefes alma kapasitesini göreceli olarak yükselttiğini göstermiştir. 1998 yılında yapılan çalışmada 80 astım-bronsit hastası 6 hafta boyunca her gün ya boswellia ya da plasebo kullandılar. Plasebo kullananların sadece %27’sinin astım semptomları gelişme göstermişti. Bu oran boswellia kullananlarda %70’di.
Boswellia Serrata Ekstresi
Boswellianın standart dozu, %37.5-65 arası boswellic asit içerir, bu oran kapsül başına 150-200 mg anlamına gelir. Boswellia ile ilgili çalışmaların çoğunda günlük doz 450 mg. (150 mg.lık 3 doz) ve 1200 mg. arasında belirlenmiştir.
Yan Etkileri Var mı?
Boswellia ekstresi, bulantı ve ishal gibi hafif gastrointestinal semptomlara yer verebilir, yer yer deride döküntüler görülebilir."Yukarıda yer alan metin haber ve bilgi amaçlı hazırlanmış olup hekimin uygulayacağı teşhis ve tedavisinin yerine geçmez. Herhangi bir tedavi sürecine başlamadan önce mutlaka sağlık uzmanının görüş ve onayı alınmalıdır."Yorum yap
-
BOSWELLİA İle Çölyak (Gluten) Hastalığı
Boswellia Serrata Roxb'in Etkileri . ve Bağışıklık Hücreleri ve Caco-2 Kullanarak Bir İn Vitro Bağırsak Enflamasyon Modelinde Curcuma longa L.
Paolo Governa , 1, 2, * Maddalena Marchi , 1 Veronica Cocetta , 3 Bianca De Leo , 4 Philippa TK Saunders , 5 Daniela Catanzaro , 3 Elisabetta Miraldi , 1 Monica Montopoli , 3, 6 ve Marco Biagi 1
Yazar bilgileri Madde notları Telif Hakkı ve Lisans bilgileri Uyarı
Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler
Yardımcı Malzemeler
Şuraya git: Öz
Kolonun ve ince bağırsağın kronik inflamatuar durumlarından oluşan inflamatuar bağırsak hastalıkları, modern toplumumuzun küresel bir hastalığı olarak kabul edilir. Son zamanlarda, iltihaplı bağırsak hastalıklarının tedavisi için bitkisel tedavilerin kullanımına yönelik ilgi, geleneksel ilaçlara kıyasla etkinliği ve uygun güvenlik profili nedeniyle artmıştır. Boswellia serrata Roxb. ve Curcuma longa L. en umut verici bitkisel ilaçlar arasındadır, ancak enflamatuar bağırsak hastalıklarında klinik kullanımları sınırlıdır ve etki mekanizmaları hakkında çok az şey bilinmektedir. Bu çalışmanın amacı, fitokimyasal olarak karakterize edilen iki B. serrata ve C. longa ekstresinin etkilerini araştırmaktı.in vitro bağırsak iltihabı modelinde. Sitokin salınımı ve reaktif oksijen türlerinin üretimi üzerindeki etkilerinin yanı sıra bağırsak bariyeri fonksiyonunun ve bağırsak mukozası bağışıklık hücrelerine sızma üzerindeki etkileri de değerlendirilmiştir. Ekstraktlar, LPS ile uyarılan hücrelere kıyasla TEER değerleri yaklaşık 1.5 kat artarak, 1 ug / mL'de bağırsak epitelyumu üzerinde iyi bir koruyucu etki gösterdi. Longa , iltihaplı uyaranlara kıyasla IL-8, TNF-a ve IL-6 üretimini sırasıyla yaklaşık% 30,% 25 ve% 40 azaltan bir anti-enflamatuar etki mekanizması gösterdi. B. serratadır aksiyon H karşılaştırıldığında,% 25 oranında azaltılır ROS üretiminin edilir ve antioksidan etkinlik ile bağlantılıydı 2 O 2uyarılmış Caco-2 hücreleri. C. longa ve B. serrata , klinik koşullarda tanımlanmış in vitro parametreleri modüle ederek inflamatuar bağırsak hastalıklarının tedavisi için umut verici ajanlar olarak sonuçlanmıştır.
Anahtar Kelimeler: Boswellia serrata Roxb., Curcuma longa L., bağırsak bağırsak hastalıkları (IBD), Caco-2, PBMC, HMC-1.1, mast hücreleri, sitokinler, trans epitelyal elektrik direnci (TEER), reaktif oksijen türleri (ROS)
Şuraya git: 1. Giriş
İnflamatuar bağırsak hastalıkları (IBD'ler) modern toplumda çok yaygın olan, kolonun güçlü inflamatuar durumları ve ince bağırsak ile ilişkili bir grup hastalıktır [ 1 ]. IBD'lerin gerçek etiyolojisi hala bilinmemektedir [ 2 ]. IBD'lerin 20. yüzyıldaki insidansının Batı ülkeleriyle sınırlı olduğu düşünülmektedir [ 3 ], ancak 21. yüzyılda IBD insidansı tüm dünyada artmış ve bu da onu önemli bir küresel hastalık haline getirmiştir [ 4 ].
IBD'ler, bağırsakta bulunan mikroorganizmalara karşı kontrolsüz bağışıklık aktivasyonu ile karakterizedir. Mast hücrelerinin, mikrobiyal antijenler tarafından aktive edilebilecekleri bağırsak mukozal bariyerinin hemen altında bulundukları için IBD patogenezinde kritik rol oynadığı düşünülmektedir. Bu hücreler potansiyel olarak immün düzenleme üzerindeki etkileri yoluyla IBD'lere katkıda bulunabilir [ 5 , 6 ]. Gerçekten de, mast hücrelerinin bağırsak epitelinin geçirgenliğini düzenlediği, enflamatuar yanıtı başlattığı ve koruduğu ve doku yeniden şekillenmesinde yer aldığı gösterilmiştir [ 7]. İlginç bir şekilde, 5-aminosalisilik asit, kortikosteroidler ve hatta metotreksat gibi IBD'nin tedavisinde kullanılan bazı geleneksel ilaçların en azından kısmen mast hücreleri üzerinde etkili olduğu düşünülmektedir [ 8 , 9 , 10 ].
IBD'ler için mevcut farmakolojik tedaviler, inflamasyonu ve ilgili semptomları azaltabilen 5-aminosalisilatlar, kortikosteroidler, immünsüpresif ve biyolojik ajanlar gibi ilaçların kullanımına odaklanmaktadır [ 11 ]. Bununla birlikte, bu ilaçlar, terapötik uygulamalarını sınırlayan döküntü, bulantı ve kusma gibi bazı yan etkiler göstermektedir [ 12 ].
Bitkisel tedaviler eski zamanlardan beri çok çeşitli hastalıkları tedavi etmek için kullanılmaktadır [ 13 , 14 ] ve aynı zamanda geçerliliği ve güvenliği daha iyi bir profili nedeniyle IBD'lerde konvansiyonel tedavilere geçerli bir alternatif olabilir.
Mevcut çoklu fitoterapik ajanlar arasında Curcuma longa L. rhizome (zerdeçal) ve Boswellia serrata Roxb. sakız reçinesi (boswellia) IBD'lerin yönetimi için en umut verici bitkisel ilaçlar arasında kabul edilmektedir [ 15 ].
Avrupa İlaç Ajansı'na göre, C. longa kökü, gastrointestinal bozuklukların giderilmesi için geleneksel kullanımdan türetilen terapötik bir endikasyona sahiptir [ 16 ]. Curcuminoidler lipooksijenazları, siklooksijenazları ve fosfolipazları inhibe edebilir ve AP-1, STAT ve NF-κB yollarında etki edebilir [ 17 , 18 ]. Ayrıca, zerdeçalın biyolojik aktivitesi ile önemli bir serbest radikal temizleme faaliyeti ilişkilendirilmiştir [ 19 ].
2014 yılında McCann ve arkadaşları kurkumin açısından zengin zerdeçal ekstraktlarının insan embriyonik böbrek hücrelerinde IBD ile ilişkili bir IL-10 promotör varyantının aktivitesini arttırabildiğini gösterdiler [ 20 ]. Ayrıca curcumin, kimyasal olarak indüklenen kolitin bir fare modelinde CD4 (+) lenfositler tarafından splenositlerin yanı sıra IL-4 ve IL-5 salgılanmasının çoğalmasını inhibe etti [ 21 ]. Daha sonra aynı grup, kurkumin'in kolon epitel hücrelerinden ve makrofajlarından MIP-la, MIP-2 ve IL-1β salımını ve nötrofillerden IL-8 salımını zayıflatabildiğini göstermiştir [ 22 ].
Dünya Sağlık Örgütü'ne göre, IBD'lerin yönetimi için boswellia kullanımı klinik kullanım ile desteklenmektedir [ 23 ]. Boswellia'nın anti-enflamatuar aktivitesi, lipooksijenazların ve NF-κB'nin inhibisyonu ile ilişkilidir [ 24 ]. Ayrıca, boswellia'nın antioksidan aktivitesine katkıda bulunan lipit peroksidasyonunun inhibisyonu ve süperoksit dismutaz düzeylerindeki artış, sıçanlarda bir in vivo kolit modelinde gözlenen bağırsak antienflamatuar etki ile ilişkili bulunmuştur [ 25 , 26 ].
Biyolojik potansiyellerine rağmen, IBD'lerde zerdeçal ve boswellia'nın klinik kullanımı, birçok ülkede kayıtlı ilaçların bulunmaması ve klinik çalışmalarda kullanılan preparatların değişkenliği nedeniyle hala sınırlı ve tartışmalıdır.
Bu nedenler bizi iki Curcuma longa L. rhizome (CUR) ve Boswellia serrata Roxb kuru ekstresinin in vitro etkinliğini araştırmamıza yol açtı . Bu bitkisel ilaçların enflamatuar koşullarda bağırsak bariyerinin bütünlüğünü koruma kapasitesini değerlendiren yenilikçi bir multimodal protokol kullanarak IBD'ler için potansiyel ilaçlar olarak sakız reçinesi (BOS). Bağırsak iltihabındaki Cur ve BOS'un etki mekanizmasını daha iyi araştırmak için, farklı enflamatuar hücre yanıtlarına katılımlarını, insan epitel kolorektal hücrelerinde sitokinlerin ve ROS salınımının yanı sıra bağışıklık hücrelerinde sitokin modülasyonunu (yani, periferik kan mononükleer hücreleri ve mast hücreleri).
Şuraya git: 2. Sonuçlar
2.1. Kuru Ekstraktların Kimyasal Analizleri
Tablo 1 , CUR ve BOS'un kimyasal detaylarını özetlemektedir. tablo 1
Curcuma longa L. rhizome (CUR) ve Boswellia serrata Roxb'un kimyasal bileşimi . sakız reçinesi (BOS). * Catanzaro ve ark., 2015.Uygun KKO Kurkumin içeriği, Ph. Eur. 9. yöntem,% 56.85 ±% 2.79 ile sonuçlandı. Daha doğru HPLC-DAD analizleri Ph. Eur'un kolorimetrik yöntemi için iyi bir güvenilirlik ortaya koymuştur . 9. , kurkumin olarak ifade edilen toplam kurkuminoidlerin% 56.06 ±% 0.76 olduğu bulunmuştur. Kurkumin, toplam kurkuminoidlerin% 87.48'ini, biftoksikürümininin% 10.67'sini ve bismetoksikürüminin% 1.85'ini temsil etti. Bu nedenle CUR'nin fitokimyasal paterni, ticari olarak temin edilebilen yaygın bir C. longa ekstraktını, curcuminoidler [ 27 ] ve curcumin içeriğiyle, diğer curcuminoidlerle karşılaştırıldığında, doğal C. longa köklerinden [ 28 ] daha yüksektir . Ayrıca CUR, tedarikçi tarafından beyan edilen kurkumin içeriğini de başarmıştır.KKO toplam kurkuminoidler Ph. Eur. 9. yöntem 56,85 ± 2,79 toplam kurkuminoidler HPLC-DAD 56.06 ± 0.76 kurkumin 49.04 ± 0.40 demethoxycurcumin 5.98 ± 0.11 bisdemethoxycurcumin 1.04 ± 0.03 BOS toplam triterpenler Kolorimetrik yöntem 68,41 ± 3,33 toplam boswellic asitler * HPLC-MS
HPLC-DAD-ELSD39 KBA * 5.02 ± 0.09 AKBA * 2.71 ± 0.09
Bu çalışmada, BOS'taki toplam triterpen içeriği, çalışılan örneğin kalite kontrol amacıyla hızlı, ucuz ve onaylanmış kolorimetrik bir yöntemle analiz edilmiştir. BOS içindeki toplam triterpenler ekstraktın% 68.41 ±% 3.33'ünü verdi. Gerçekten de, aynı örnek (aynı tedarikçi, aynı parti) Catanzaro ve meslektaşları tarafından daha doğru bir şekilde analiz edilmiştir [ 29 ], BOS'taki boswellic asitlerin% 39 olduğunu, ana tek 11-keto-β-boswellic asit (KBA) olduğunu bildirdi. bileşen (% 5.02) ve asetil-11-keto-p-boswellic asit (AKBA)% 2.71'dir.
Farklı bir şekilde CUR'u oluşturan BOS, beyan edilen kimyasal bileşimi sadece kısmen yerine getirmiştir, çünkü talep edilen% 65'lik boswellic asit titrasyonu, aslında kolorimetrik yöntemle ölçülen toplam triterpenlerle temsil edilirken, boswellic asitlerin% 39 olduğu bulunmuştur. Bu sonuçlar, Mannino ve iş arkadaşlarının [ 30 ] ticari olarak temin edilebilen Boswellia spp. sakız reçine özleri. 2.2. Caco-2, PBMC ve HMC-1.1'de İnflamatuar Model: Sitokin Dozları
İlk olarak, literatürde bildirildiği gibi, bağırsak iltihabının bağırsak epitel hücreleri tarafından sitokin salınımı ile ilişkili olmadığını doğruladık [ 31 ]. Bağırsak luminal epitelyum modeli olarak Caco-2 hücrelerini kullandık.
Bakteriyel lipopolisakkaritin (LPS) pro-enflamatuar konsantrasyonu ile stimülasyondan sonra Caco-2 tarafından salınan sitokinlerin ölçümü, IL-6, IL-8 ve IL-10 seviyelerinin LPS stimülasyonu (500 ng / mL) ile değil, TNF ile modifiye edildi. -a, işlenmemiş kontrollere kıyasla 1.38 kat yukarı regüle edildi ( Şekil 1 ).
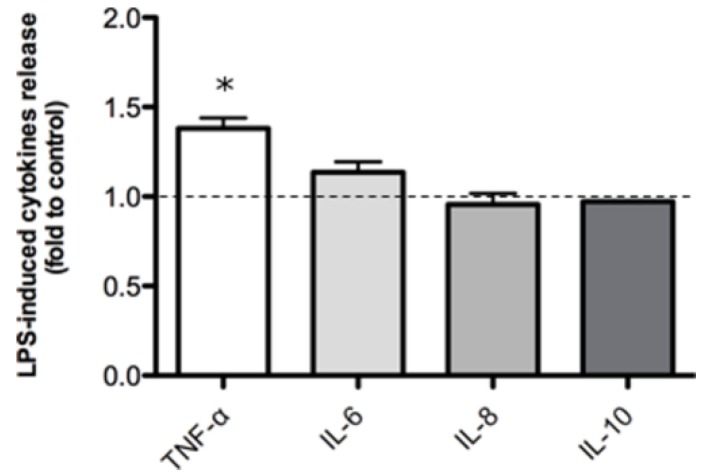
Şekil 1
24 saatlik LPS stimülasyonundan (500 ng / mL) sonra Caco-2 hücrelerinde sitokin salımı. Kesik çizgi işlenmemiş kontrolü temsil eder. * kontrole karşı p <0.05.
Epitel hücreleri tarafından in vitro olarak sitokinlerin zayıf salımına rağmen, sitokin düzeyleri, ülseratif kolit ve Crohn hastalığı gibi IBD'lerin korunmasında ve teşvik edilmesinde çok önemli kabul edilir. Bağırsak iltihabı sırasında gözlenen yüksek sitokin üretim seviyeleri muhtemelen bağışıklık hücrelerine sızmaktan kaynaklanmaktadır [ 32 ].
Bu nedenle dikkatimizi periferik kan mononükleer hücreleri (PBMC) kullanarak LPS kaynaklı bir inflamasyon modeline odakladık ve CUR ve BOS'un anti-inflamatuar aktivitesini araştırdık.
PBMC kullanan enflamatuar model, LPS stimülasyonunu takiben sitokin üretimi üzerinde önemli bir etki olduğunu doğruladı. Özellikle TNF-a, yaptığımız her deneydeki kontrole kıyasla 50 kat yukarı regüle edildi. IL-6 da güçlü bir şekilde yukarı regüle edildi (kontrole kıyasla 15 kattan fazla) ( Şekil S2 ).
LPS ile indüklenen IL-8 yukarı regülasyonu, diğer sitokinlere kıyasla daha az çarpıcıydı, ancak istatistiksel olarak anlamlıydı ve bu kemo-çekicinin LPS tarafından indüklendiğini doğruladı ( Şekil 2 ).
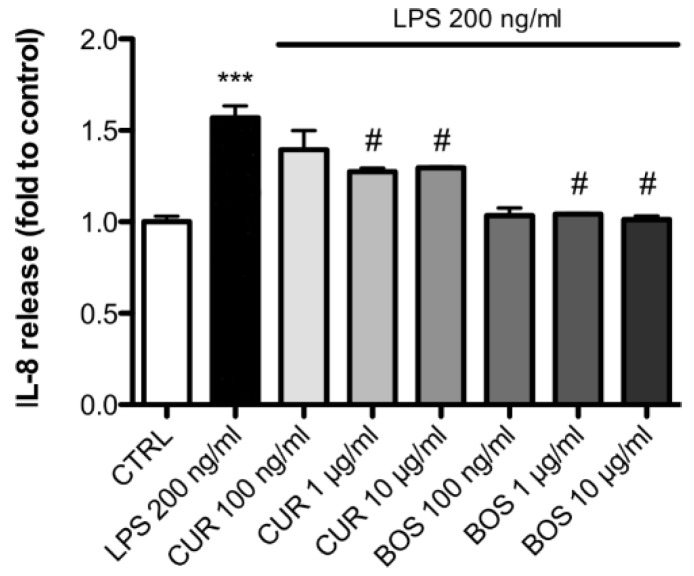
şekil 2
24 saatlik LPS stimülasyonundan (200 ng / mL) sonra PBMC'de IL-8 salınımı; hücreler 24 saat süreyle CUR ve BOS ile önceden inkübe edildi. *** kontrole karşı p <0.001; # p <0.05, uyarana karşı.
Test edilen konsantrasyonların hiçbirinde ne CUR ne de BOS, PBMC tarafından LPS ile uyarılan TNF-a ve IL-6 üretimini modüle etmedi ( Şekil S1 ).
Buna karşılık, LPS tarafından indüklenen IL-8 yukarı regülasyonu hem CUR hem de BOS tarafından inhibe edildi ( Şekil 2 ); LPS ile uyarılan hücrelere kıyasla IL-8 salınımını sırasıyla% 14.84 ve% 13.23 inhibe eden 1 ve 10 ug / mL'de CUR ile görülen önemli azalmalar. Kullanılan en düşük konsantrasyonda (100 ng / mL) CUR, uyarılmış PBMC'de IL-8 salınımını inhibe etmede etkili değildi.
Benzer şekilde, BOS, sırasıyla% 9,32 ve% 11,90 azalma ile istatistiksel olarak anlamlılık sadece 1 ug / mL ve 10 ug / mL'de elde edilmiş olsa bile, test edilen konsantrasyonların her birinde uyarılmış PBMC'de IL-8 salınımını inhibe etti, LPS gruplarına kıyasla ( Şekil 2 ).
Ek olarak, en temsili düzenleyici sitokin olan IL-10'un salımı, enflamatuar olmayan koşullarda izlendi. CUR ile inkübe edilen PMBC tarafından IL-10 salınımı, kontrol grubuna kıyasla% 19.52 oranında yukarı regüle edildi. Aksine, BOS'un IL-10 üzerinde hiçbir etkisi olmamıştır ( Şekil 3 ).

Figür 3
CUR ve BOS ile 24 saat inkübasyondan sonra PBMC'de IL-10 salımı. * kontrole karşı p <0.05.
PBMC ile yapılan önceki deneylerin bir sonucu olarak, minimum etkili konsantrasyon olan 1 ug / mL'lik konsantrasyon, başka deneyler için seçilmiştir.
LPS stimülasyonundan sonra TNF-a salım modülasyonu ve Caco-2 hücreleri üzerinde CUR ve BOS tedavisi yeniden değerlendirildi ( Şekil 4 ). CUR veya BOS ile inkübasyonun, Caco-2'de LPS ile indüklenen TNF-a'nın sırasıyla% 25.60 ve% 13.82 oranında inhibe edilmesinde etkili olduğu fark edildi.
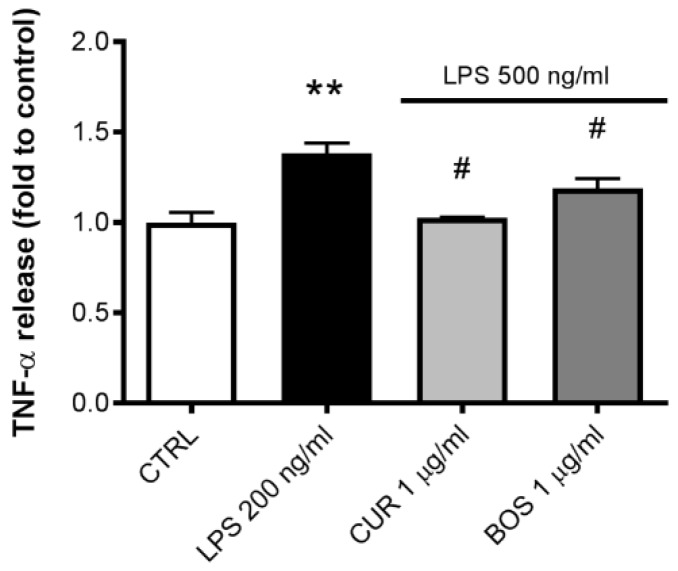
Şekil 4
24 saat LPS stimülasyonundan (500 ng / mL) sonra Caco-2'de TNF-a salımı; hücreler 24 saat süreyle CUR ve BOS ile önceden inkübe edildi. ** kontrole karşı p <0.01; # p <0.05, uyarana karşı.
Daha sonra, birkaç immün hücre alt popülasyonundan oluşan PBMC'de gözlenen sitokinlerin modülasyonunu daha iyi anlamak için, IBD'lerde yer alan spesifik bir immün hücre hattının davranışını analiz ettik. Bu nedenle, IL-6, IL-8, IL-10 ve TNF-a gibi enflamatuar sitokinlerin mast hücreleri (HMC-1.1) tarafından salımını değerlendirdik, çünkü bunların enflamatuar koşullarda önemli bir rol oynadığına inanılıyor.
Son literatüre göre, HMC-1.1 hücrelerinde TLR4 ekspresyonu ve LPS stimülasyonu tartışmalıdır [ 33 ]. Bu nedenle, anlamlı ve güvenilir sitokin salınımı elde etmek için enflamatuar uyaran olarak phorbol 12-miristat, 13-asetat (PMA) seçiyoruz [ 34 , 35 ].
HMC-1.1 hücrelerinin PMA ile stimülasyonu, muamele edilmemiş kontrole kıyasla sırasıyla TNF-a, IL-6 ve IL-8'in 4, 8 ve 4,5 kat artmış salgılanmasına neden oldu.
İlginç bir şekilde, HMC 1.1 tarafından üretilen en bol PMA kaynaklı sitokin olan IL-6, sırasıyla% 39.44 ve% 39.06 ile hem CUR hem de BOS tarafından önemli ölçüde inhibe edildi ( Şekil 5 ).
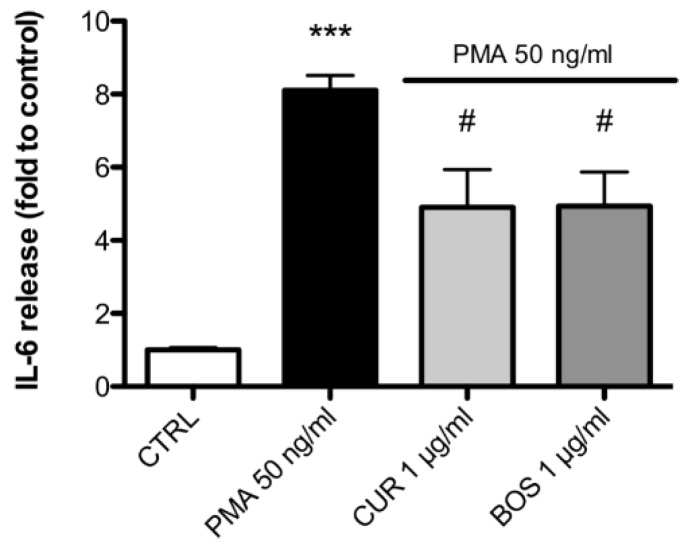
Resim 5
24 saatlik PMA stimülasyonundan (50 ng / mL) sonra HMC-1.1'de IL-6 salımı; hücreler 24 saat süreyle CUR ve BOS ile önceden inkübe edildi. *** kontrole karşı p <0.001; # p <0.05, uyarana karşı.
Test edilen konsantrasyonların her birinde ne CUR ne de BOS, PMA tarafından uyarılan HMC-1.1'de TNF-a ve IL-8'in salınımını modüle etmedi (gösterilmemiştir).
IL-10 salımı da izlendi, ancak HMC-1.1 hücrelerinin CUR ve BOS (gösterilmemiştir) ile tedavisinden sonra hiçbir değişiklik tespit edilmedi. 2.3. ROS Üretiminin Ölçülmesi
Reaktif oksijen türlerinin (ROS) üretimi her hücre hattında yaygın olduğundan ve enflamatuar koşullarda yer alan tipik bir olgu olduğundan [ 36 ], Caco-2 hücrelerinde CUR ve BOS tarafından ROS modülasyonunu analiz ettik.
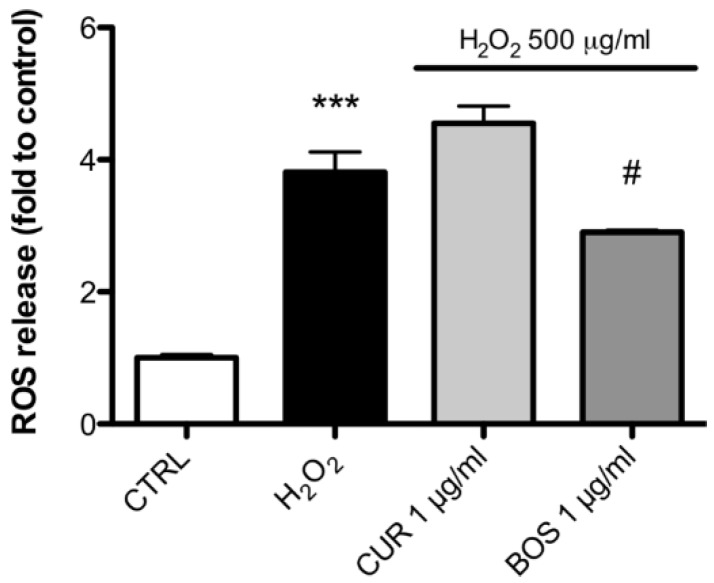
Analizimiz H gösterdi 2 O 2 kontrole kıyasla kat 3.83 göre Caco-2 ROS üretimini arttırmıştır. BOS 1 ug / ml H kıyasla 24.33% sağlanan ROS üretiminin azalması 2 O 2 KKO 1 ise ug / ml ROS üretimini engellemede etkisiz olduğunu, sonra, H 2 O 2 uyarımı ( Şekil 6 ).
Resim 6
Caco-2 hücreleri ROS salma lH sonra 2 O 2 uyarılması (500 ug / ml); hücreler 24 saat süreyle CUR ve BOS ile önceden inkübe edildi. *** kontrole karşı p <0.001; # p <0.05, uyarana karşı. 2.4. Bağırsak Geçirgenliği: TEER Ölçümleri
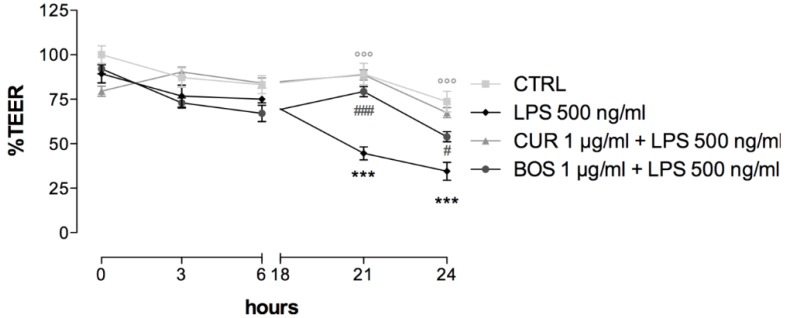
Daha önce açıklandığı gibi, yüksek seviyelerde sitokinler ve lökosit aktivasyonu, bağırsak mukozasının bütünlüğündeki bir değişikliğin ve dolayısıyla artan epitelyal geçirgenliğin bir sonucu olarak daha iyi çerçevelenebilir. Bu nedenle, BOS ve CUR'un koruyucu etkisini değerlendirmek için LPS ile uyarılan Caco-2 hücrelerinde trans-epitelyal elektrik direncini (TEER) ölçerek bağırsak epitel bariyerinin bütünlüğünü değerlendirdik ( Şekil 7 ).
Resim 7
LPS stimülasyonundan (500 ng / mL) sonra Caco-2 hücrelerinde trans epitelyal elektrik direnci (TEER) ölçümü. hücreler 24 saat süreyle CUR ve BOS ile önceden inkübe edildi. *** p <0.001 uyarana karşı kontrol; ° uyarıcı ° p <0.001 CUR, uyarana karşı; ### p <0.001 BOS genel uyaran; # p <0.05 CUR ve uyaran.
TEER, başlangıç değerine normalize edilen direnç yüzdesi olarak ifade edilir.
LPS ile tedavi, TEER değerini, tedavi edilmemiş kontrole kıyasla 21 ve 24 saat sonra sırasıyla% 55.04 ve% 65.51 azaltmıştır.
CUR bağırsak bariyerini neredeyse tamamen korudu ve TEER değerini 21 saat sonra% 43.73 ve 24 saat sonra 24 saat sonra LPS'ye kıyasla% 32.98 arttırdı.
BOS ile ön-tedavi, TEPS değerini 21 ve 24 saat sonra, LPS'ye kıyasla sırasıyla% 34.33 ve% 19.41 arttırmıştır, böylece enflamatuar uyaranın neden olduğu epitel hasarını önemli ölçüde geri döndürmektedir. 2.5. Lökosit İnfiltrasyonu: PBMC Yapışma Tayini
Bağışıklık hücresi infiltrasyonu, bağırsak iltihabı oluşumu için kritik bir olaydır. LPS ile uyarılan Caco-2 ve PBMC arasında bir ortak kültür geliştirerek, bağırsak iltihabını simüle etmeye çalışarak CUR ve BOS ön tedavisinin etkisini nitel olarak değerlendirdik.
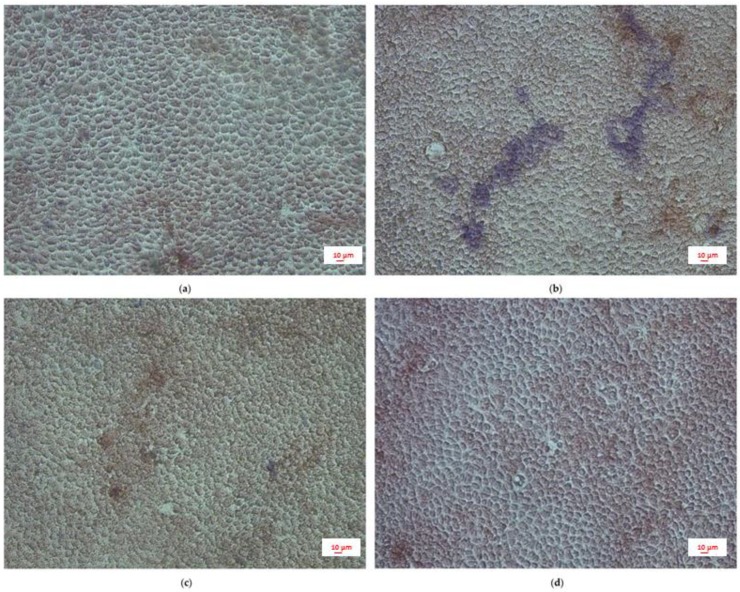
LPS stimülasyonu, mavi lekeli lekeler ( Şekil 8 b) ile temsil edilen ve CUR veya BOS ile tedavi ile inhibe edilen kolayca saptanabilir bir lökosit infiltrasyonu ile sonuçlandı ( Şekil 8 c, d).
Resim 8
PBMC yapışma deneyi: ( a ) kontrol, ( b ) LPS 500 ng / mL, ( c ) CUR 1 ug / mL + LPS 500 ng / mL, ( d ) BOS 1 ug / mL + LPS 500 ng / mL. Caco-2 hücreleri 24 saat CUR ve BOS ile önceden inkübe edildi ve daha sonra 24 saat LPS (500 ng / mL) ile uyarıldı. PBMC, 1 saat boyunca Caco-2 ile birlikte kültürlendi.
TEER ölçümleri ile uyumlu olarak, yapışma deneyi CUR ve BOS'un bağırsak epitelyumu üzerinde güçlü bir koruyucu etkisi olduğunu göstermiştir.
Şuraya git: 3. Tartışma
IBD'ler, oksidatif hasar ve inflamasyon ile karakterize edilen güçlü bir antijenik yanıta yol açan bağırsak bariyeri disfonksiyonları ile sıkı bir şekilde ilişkilidir [ 37 ].
Bu çalışmada, IBD'lerin yönetimi için en umut verici bitkisel ilaçlar, yani C. longa ve B. serrata [ 15 ] 'in biyolojik aktivitelerini, aşağıdakilerle ilgili çoklu hücre ve moleküler değişiklikleri dikkate alan entegre bir in vitro protokol vasıtasıyla inceledik . bağırsak iltihabı koşulları.
Hem CUR hem de BOS, TEER değerlerini artırarak ve bağışıklık hücresi infiltrasyonunu azaltarak epitelyal bariyer üzerinde güçlü bir koruyucu etki göstermiştir. Bu veriler, boswellia için önceki deneylerimizle uyumludur [ 29 ], fakat aynı zamanda zerdeçalın yeni ve ilginç bir biyolojik etkisi olduğunu düşündürmektedir.
Caco-2 hücrelerinin ve PBMC'nin birlikte kültürü, kan mononükleer hücrelerinin, iltihaplı bağırsak epitel hücrelerinin değiştirilmiş bütünlüğüne bağlı infiltrasyon sürecine nasıl katıldığını göstererek, bağırsak iltihaplanma durumlarının dinamik ve daha gerçekçi bir resmiyle sonuçlandı.
Modelimizde, TNF-α düzeylerinde hafif bir artış dışında, tedavi edilmemiş kontrole kıyasla LPS ile uyarılan Caco-2'de sitokin düzeylerinde bir değişiklik tespit edemedik. Bu veriler, LPS ile uyarılan (10 ug / mL) Caco-2 hücrelerinde sitokin salınımı ve diğer enflamatuar markerler üzerinde hiçbir etki gözlemlemeyen Van De Walle ve arkadaşları [ 38 ] tarafından elde edilenlerle tutarlıdır . Bununla birlikte, Huang ve çalışma arkadaşları [ 39 ], 100 ug / mL konsantrasyonunda LPS kullanarak 24 saatlik enflamatuar stimülasyondan sonra IL-8 salınımında bir artış bildirdiler. Gerçekten de, bağırsak iltihabı epitel hücreleri tarafından sitokin salınımı ile ilişkili görünmemektedir. Caco-2'de bunun nedeni muhtemelen TLR-4 ve ifade edilen MD-2'nin düşük seviyesinden kaynaklanmaktadır [ 40]. Bu reseptörler aslında lümen yerine kriptlerde eksprese edilir ve LPS uyaranına verilen cevapta aracılık ederek NF-signalB sinyal aktivasyonuna neden olur [ 31 ]. Farklı çalışmalardaki deneysel sonuçlar arasındaki farklar, kültür koşulları ve kullanılan hücre klonunun tipine bağlı olabilir [ 38 , 41 , 42 ]. Aksine, bağışıklık hücreleri IBD'lerde bağırsak sitokinlerinin birikmesinden büyük ölçüde sorumludur [ 43 ]. Bu nedenlerden ötürü, IBD'lerde CUR ve BOS'un anti-enflamatuar etki mekanizmalarını daha iyi anlamak amacıyla enflamatuar bir ortamı simüle etmek için bağışıklık hücreleri kullandık.
Farklı hücre tiplerinde enflamatuar uyaranlardan sonra CUR ve BOS tarafından modüle edilen sitokinlerin kapsamlı analizi, test edilen numunelerin 1 ug / mL konsantrasyonunda bazı tuhaf anti-enflamatuar etkinliğe sahip olduğunu ortaya koymuştur. Özellikle, hem CUR hem de BOS, mast hücrelerinden IL-6 salımının azaltılmasında etkiliydi, CUR, Caco-2'de TNF-a salımının azaltılmasında daha etkili iken, BOS, PBMC'de IL-8 salımının azaltılmasında daha etkili oldu. PBMC'den gelen IL-8 salımındaki azalma, modelimizde IL-1 different üzerinde farklı sonuçlar elde etsek bile, nötrofillerde benzer bir aktivite gözlemleyen Larmonier ve meslektaşları tarafından elde edilen sonuçları doğrulamıştır [ 22 ].
TNF-a'nın in vivo ve in vitro bağırsak geçirgenliğini arttırdığı bilinmektedir [ 44 ]. Bunun meydana geldiği mekanizmalar, NF-κB yolağını içeren transkripsiyonel seviyede MLCK ekspresyonunun modülasyonu ile ilgilidir [ 45 , 46 , 47 ]. MLCK üzerindeki etkiler, PI3K / Akt yolunun aracılık ettiği ve TEER'deki azalmadan sorumlu olan claudin-2 ekspresyonunun bir modülasyonu ile ilişkilidir [ 48 ]. Bağırsak geçirgenliğinin TNF-a aracılı modülasyonunda yer alan diğer yollar tirozin kinazları ve PKA'yı içerir [ 49 ]. Son olarak, TNF-a'nın apoptotik etkisi bağırsak geçirgenliğindeki artışla ilişkilendirilmiştir [ 50 , 51], bu sadece T84 ve HT29 / B6 hücrelerinde görülmüş olsa da Caco-2 hücrelerinde görülmemiş olsa bile [ 52 , 53 , 54 ].
IL-6'nın intestinal bariyer fonksiyon bozukluklarındaki rolü tartışılmıştır [ 55 ]. Tazuke ve arkadaşları IL-6 ile uyarılan Caco-2 hücrelerinde hücre içi fosfolipitlerde meydana gelen değişiklikler yoluyla bağırsak geçirgenliğinin değiştiğini bildirmişlerdir [ 56 ]. Ayrıca, IL-6, MEK / ERK ve PI3K yollarında claudin-2 ekspresyonunu uyararak TEER ve sıkı kavşak geçirgenliğinde bir azalmaya neden olmuştur [ 57 ]. Bununla birlikte Wang ve çalışma arkadaşları, IL-6 ile uyarılan Caco-2'de keratin-8 ve keratin-18'de bir artış gözlemlediler, bu nedenle IL-6'nın zayıf bağırsak bariyerinde koruyucu bir rolü olduğunu düşündürmektedir [ 58]. Daha yakın zamanlarda, Al-Sadi ve meslektaşları IL-6'nın JNK'yi uyararak ve sonuç olarak claudin'den sorumlu AP-1'i aktive ederek bağırsak geçirgenliğinde bir boyut seçici (yani moleküler yarıçapı <4 Å olan moleküller için) neden olabileceğini açıkladılar. -2 arttı ve TEER azaldı [ 59 ].
PMA ile uyarılan HMC-1 hücrelerinde IL-6 üretimi yaygın olarak rapor edilmiştir [ 60 , 61 , 62 ]. PMA ile uyarılan mast hücrelerinde sitokin üretimi ile ilişkili hücre içi yollar arasında ROS üretimi ve p38 ve NF-κB aktivasyonu bulunur [ 62 , 63 ].
HT29 hücrelerinde TNF-α, ERK ve p38'in aktivasyonu yoluyla IL-8'in salınmasını uyarmıştır [ 64 ]. IL-8, tam transepitelyal göç için başka kemotaktik faktörler gerekli olsa bile, nötrofillerin lamina propriaya alınması için çok önemlidir [ 65 ]. Ayrıca, LPS ile uyarılan PBMC'de, IL-8 seviyelerindeki artışın, TNF-α gibi diğer sitokinlerin NF-κB ve PI3K / Akt aktivasyonu yoluyla artan üretiminin bir sonucu olduğu düşünülmektedir [ 66 , 67 ].
IL-10 ile ilgili olarak, T84 hücrelerinde interferon kaynaklı TEER azalmasından koruyucu bir etki bildirilmiştir [ 68 ]. Caco-2'de, glukokortikoidlerle kombinasyon halinde kullanıldığında TNF-a ile indüklenen TEER'den korunan IL-10 azalır ve bu etki p38 MAPK'nın aktivasyonu ve E-kaderin ve desmoglein seviyelerindeki artışla ilişkilidir [ 69 ]. bağırsak bariyeri ile IL-10 arasında koruyucu etkisinin ısı şok proteinleri [indüklenmesine olabilir 70 ] ve ZO-1 modülasyonu ile ilişkili olan, E-kadherin ve okludin in vivo [ 71 ].
Zerdeçal ve kurkumin'in sitokin salınımı üzerindeki etkileri, çok sayıda hücre ve hayvan modeli kullanılarak iyi belgelenmiştir ve AP-1, MAPK, PKC, MMP ve özellikle NF-κB'nin modülasyonu yoluyla aracılık edilebilir [ 72 , 73 , 74 ]. Ayrıca, kurkumin, TLR ekspresyonunu aşağı regüle ederek, TRL4 dimerizasyonunu inhibe ederek ve MD-2'deki LPS bağlanma sahasına bağlanarak LPS sinyali ile etkileşime girebilir [ 75 ]. MAPK ve NF-κB'nin sitokin salınımını inhibe etmedeki rolü de PMA ile uyarılan mast hücrelerinde gösterilmiştir [ 76 ].
Bu çalışmada, CUR ile tedavi edilen PBMC'de IL-10'da bir artış gözlemledik, bu McCann ve işbirlikçileri tarafından elde edilen sonuçlarla tutarlıydı [ 20 ]. IL-10'un zerdeçal ekstraktları ile modülasyonu yakın zamanda gözden geçirilmiştir [ 77 ] ve IBD semptomlarının düzelmesi için çok önemli olduğu düşünülmektedir [ 74 , 78 ].
Benzer şekilde, boswellia ekstraktlarının NF-nuclearB nükleer translokasyonunu inhibe ederek sitokin üretimini azalttığı gösterilmiştir ve bu etkinin esas olarak boswellic asitlere bağlı olduğu görülmektedir [ 79 ]. Bununla birlikte, LPS ile uyarılan PBMC'de iNOS ekspresyonunun yanı sıra p38 ve JNK (ERK değil) fosforilasyonunun azaltılması 12-ursen-2-diketona bağlanmıştır [ 80 ].
Bu veriler ışığında, önemli ve anlamlı olmasına rağmen biyosentezin modülasyonunun ve sitokinlerin salınmasının IBD'lerde bu fitoterapiklerin ana etki mekanizması olarak kabul edilemeyeceğini varsayıyoruz.
BOS'un antioksidan özellikleri, anti-enflamatuar etkileri yerine, bu ekstraktın bağırsak inflamasyonundaki koruyucu etkisini daha iyi açıklayabilir ve daha önce bildirildiği gibi kısmen en azından belirli bir etki mekanizması olarak işaretlenebilir [ 29 ]. Gerçekten de, farklı in vivo modellerde süperoksit dismutaz, katalaz, glutatyon peroksidaz ve azaltılmış glutatyon artışı ile birlikte lipit peroksidasyonunda bir azalma bildirilmiştir [ 25 , 26 , 80 ]. Bu çalışmada, H BOS bir koruyucu etki gözlenmiştir 2 O 2 Caco-2, ROS üretiminin azalması nedeniyle -uyanlmış. KKO H, Caco-2 hücreleri korumak mümkün değildi 2 O 2zerdeçalın önemli bir radikal temizleme etkinliğine sahip olduğu düşünülse bile, kaynaklı ROS birikimi [ 19 ].
CUR ve BOS tedavisi ile gözlenen geçirgenlik bakımı ve sitokin ve ROS seviyesinin azaltılması ile birlikte lökosit infiltrasyonunun inhibisyonu, bu fitoterapiklerin çoklu etki mekanizmaları yoluyla ortaya çıkan bağırsak iltihabı üzerindeki yararlı etkisini ortaya çıkarmıştır. Ayrıca bulgularımızı daha önce bildirilen verilerle karşılaştırmak [ 29] ve laboratuvarlarımızda yapılan ön araştırmalarda (veriler gösterilmemiştir), asetil-11-keto-β-boswellic asit (AKBA) ve kurkumin (ana bileşenleri sırasıyla boswellia ve zerdeçal). Bu, yüksek bir AKBA ve kurkumin içeriğine sahip olabilen tüm bitkisel fito-kompleksin kullanılmasının benzer terapötik etkilere yol açabileceğini, ancak bunun daha düşük konsantrasyonda aktif prensipler uygulanarak da gerçekleştirilebileceğini doğrulamaktadır.
Şuraya git: 4. Gereç ve Yöntem
4.1. Ekstrakt Hazırlama ve Kimyasal Analiz
Siena'daki bir eczanede% 45 curcumin (Curcuma Phyto Plus, Cento Fiori, Forli, İtalya) içerecek şekilde standardize edilmiş ticari bir kuru Curcuma longa L. rhizome özü satın alındı. Kurkumin ve kurkuminoit içeriği European Pharmacopoeia (de tanımlanan spektrofotometrik yönteme göre ölçülmüştür Ph. Eur. 9. ) [ 7 ].
Boswellia serrata Roxb'un kuru ekstresi . % 65 boswellic asit içerecek şekilde standardize edilmiş sakız reçinesi, EOS, Treviso, İtalya tarafından hafifçe sağlandı. Deneyler üç kez tekrarlandı. Tüm kimyasallar ve solventler Sigma-Aldrich, Milano, İtalya'dan satın alındı.
4.1.1. Kurkumin Miktarı
100 mg CUR'a 60 mL glasiyal asetik asit ilave edildi ve çözelti, 90 ° C'de geri akış altında 60 dakika ısıtıldı. 2 g borik asit ve 2 g oksalik asit ilave edildi ve çözelti 90 ° C'de 10 dakika geri akış altında ısıtıldı.
Çözelti, oda sıcaklığına kadar soğutuldu ve hacim, glasiye asetik asit ile 100 mL'ye ayarlandı. 1 mL çözelti, glasiye asetik asit ile 50 mL'ye seyreltildi ve çok tabakalı bir spektrofotometre UV-MC2 (Safas, Monako, Monako Prensliği) kullanılarak absorbans 530 nm'de kaydedildi. Plastik küvetler (1 cm optik yol uzunluğu) kullanıldı.
Kurkumin içeriği Ph. Eur. 9. aşağıdaki gibi:
Kurkumin% = (absorbans × 0.426) / ağırlık (g) × seyreltme faktörü
4.1.2. Kurkumin Miktar Tayini (HPLC-DAD Yöntemi)
CUR (400 mg) 80 mL metanol içinde çözüldü. Çözeltinin bir porsiyonu 5 kat seyreltildi ve 0.45 um membrandan süzüldü ve HPLC analizi için kullanıldı.
KKH'deki curcuminoid içeriğinin analizi bir Shimadzu Prominence LC 2030 3D cihazı kullanılarak yapıldı. Bir Bondapak ® C18 kolonu, 10 um, 125 A, 3.9 mm x 300 mm (Waters Corporation, Milford, MA, ABD) durağan faz olarak kullanıldı. Mobil faz,% 0.5 formik asit (A) ile su ve% 0.5 formik asit (B) ile asetonitrilden oluşuyordu ve gradyan fazları: 8 dakika içinde% 50 A ila% 45 A, daha sonra 10 dakikaya kadar izokratik faz. Akış 0.9 mL / dakikaydı ve enjekte edilen hacim 10 uL idi.
Absorbans 424 nm'de kaydedildi ve ekstrakttaki curcumin, dimetoksikürümin ve bismetoksikürüminin miktarının, analitik sınıf kurkumin kullanılarak elde edilen kalibrasyon eğrisine göre kurkumin olarak hesaplandığı kaydedildi.
4.1.3. Toplam Triterpen Miktarı
Boswellic asitler HPLC tarafından doğru bir şekilde nicelendirilir, ancak bu çalışmada, Padua Üniversitesi'nde yapılan son analizler dikkate alındığında [ 29 ], toplam triterpenler için Fan ve He (2006) tarafından yayınlanan hızlı kolorimetrik test kullanılarak [boswellic asitlerin beyan edilen içeriğini doğruladık [ 81 ].
BOS, 10 mg / mL etanolik çözelti (% 96 V / V) olarak kullanıldı. 190 ul buzlu asetik aside 10 ul örnek çözeltisi ilave edildi. Buzul asetik asit çözeltisi içinde 300 ul% 5 m / V vanilin eklenmiş ve 1 mL konsantre perklorik asit eklenmeden önce 30 saniye karıştırılmıştır.
Karışım 70 ° C'de 40 dakika ısıtıldı ve soğutulduktan sonra hacim 5 mL'ye ayarlandı.
Absorbans 548 nm'de kaydedildi ve ekstrakttaki toplam triterpenlerin miktarının, analitik dereceli ursolik asit kullanılarak elde edilen kalibrasyon eğrisine göre hesaplanması. 4.2. Hücre Kültürleri
4.2.1. Periferik Kan Mononükleer Hücreleri
Periferik kan mononükleer hücreleri (PBMC), Histopaque® - 1077 (Sigma-Aldrich, Milan, İtalya) kullanılarak yoğunluk gradyanlı santrifüj ile 3 farklı sağlıklı gönüllüden elde edilen kandan izole edilmiştir [ 82 ]. Kısaca, Histopak ve yeni toplanmış heparinize kan, 15 mL'lik bir tüpe (oran 3: 5) ilave edildi ve 325 G'de 15 dakika süreyle döndürüldü. Lenfomositler halkası, 15 mL'lik bir tüp içerisinde geri kazanıldı ve salin çözeltisi ile hacme kadar seyreltildi. Üç dakikaya kadar yıkama, 240 G'de 10 dakika döndürülerek, süpernatantın uzaklaştırılması, hücre peletinin yeniden süspanse edilmesi ve salin çözeltisi ile hacme kadar seyreltilmesi suretiyle gerçekleştirildi. PBMC,% 1 1 ile RPMI 1460 ortamından oluşan bir kültür ortamında süspanse edildi.-glutamin ve% 1 penisilin / streptomisin çözeltisi. Hücre sayımı Trypan mavisi boyaması ile bir hemositometre kullanılarak yapıldı ve PBMC deneyler için hemen kullanıldı. İnkübasyon süreleri,% 5 CO ile, 37 ° C 'de gerçekleştirildi 2 .
4.2.2. Mast hücreleri
Mast hücreleri üzerinde deneyler için HMC-1.1 kullanıldı [ 83 ]. HMC-1.1 hücrelerinin bir örneği, daha önce Dr. Butterfield tarafından PTKS'ye cömertçe hediye edilmişti, bu da in vitro mast hücre araştırmaları yapmamızı sağladı. Hücreler,% 10 dana serumu ile takviye edilmiş IMDM ortamı (Gibco, Paisley, İngiltere) kültürlendi (Hyclone, Logan, UT, USA), 162 cm kullanarak 3 hücre kültürü şişeleri (Corning Incorporated, Costar ® , San Fransisco, CA, ABD) ve CO,% 5 ile 37 ° C'de inkübe 2 . Hücreler ayrılmış ve 6 kuyu kültür plakaları (Corning Incorporated, Costar toplandı ® 1 x 10 yoğunluğunda, San Fransisco, CA, ABD) 6hücre / ml. Her oyuk 3 mL hücre süspansiyonu içeriyordu. HMC-1.1 hücreleri,% 10 buzağı serumu, artı a tiyogliserin (Sigma, Gillingham, İngiltere) ile desteklenmiş IMDM ortamında tutuldu. Hücre sayımı, Trypan mavi boyama ile Countess II Yaşam Teknolojileri Hücre Sayacı (Countess ™ Invitrogen, Waltham, MA, ABD) kullanılarak yapıldı.
4.2.3. Bağırsak Epitel Hücreleri
Caco-2 hücreleri bağırsak epitelyumu için stabil bir in vitro model olarak kullanılmıştır [ 84 ]. Hücreler Amerikan Tipi Kültür Koleksiyonundan (Manassas, VA, ABD) elde edildi ve% 10 fetal sığır serumu (FBS),% 1 glutamin ve% 1 penisilin / streptomisin antibiyotik (Sigma-Aldrich, Milan, İtalya) ile desteklenen DMEM'de kültürlendi. . Hücreler,% 5 nemli bir atmosferde CO altında tutuldu 2 , 37 ° C [havada 85 , 86 ]. 4.3. Antienflamatuar Aktivitenin Değerlendirilmesi
Her hücre hattı için bir in vitro inflamasyon modeli oluşturuldu.
Numuneler% 85 V / V etanolde (Sigma-Aldrich, Milan, İtalya) çözündürüldü ve daha sonra ön iletken hücreye göre hücre kültürü ortamında 100 ng / mL, 1 ug / mL ve 10 μg / mL konsantrasyonunda seyreltildi. canlılık testleri (veriler gösterilmemiştir).
PBMC (1 x 10 6 hücre / mL), 24 gözlü plakalar içinde tohumlanır ve gram LPS ile stimüle edildi (dan Salmonella enteridis , Sigma-Aldrich, Milan, İtalya), 200 ng / mL'lik bir konsantrasyonda.
HMC-1.1 (1 x 10 6 hücre / mL), 24 gözlü plakalar içinde tohumlanır ve 50 ng / ml'lik bir konsantrasyonda, PMA (Sigma-Aldrich, Milano, İtalya) ile uyarıldı.
Caco-2 (4 x 10 4 ) 24 oyuklu plakalar içerisinde tohumlanmıştır, izdiham ulaşmak için kültüre ve LPS (500 ng / ml) ile uyarılır.
Stimülasyondan önce 24 saatlik bir BOS veya CUR ile ön işlem uygulandı.
İnkübasyon süresinden sonra numuneler donduruldu (-80 ° C'de) ve 3 kez eritildi ve süpernatanlar analiz için toplandı.
Veri sayfasında rapor edilen prosedürü takiben TNF-a, IL-6, IL-8, IL-10 dozajları için rekabetçi olmayan sandviç ELISA kiti (Biolegend e-Bioscience DX Diagnostic, Monza, İtalya) kullanıldı. Absorbans, bir SAFAS MP96 spektrofotometre kullanılarak 450 nm'de kaydedildi. 4.4. ROS Üretiminin Ölçülmesi
ROS, 2 ', 7'-dichlorofluorescin-diasetat kullanılarak nicelleştirilmiştir (lH 2 -DCF-DA, Sigma-Aldrich, St. Louis, MO, ABD) daha önce açıklandığı gibi [ 17 ]. Hücre içi esteraz ve oksidasyonla asetat gruplarının yarılması üzerine, H 2 -DCF-DA floresan 2 ', 7'-diklorofloresandiasetat (DCF) dönüştürülür. Kısaca, bağırsak hücreleri 96 oyuklu plakalara ekildi ve gece boyunca yapışmasına izin verildi. ROS seviyesi, 24 saat boyunca BOS'a (1 ug / mL) veya CUR'a (1 ug / mL) maruz bırakıldıktan sonra ölçüldü. Tedaviler çıkarıldı ve H edildi 2Her oyukta 50 uM'luk bir nihai konsantrasyon elde etmek için DCF-DA ilave edildi. Plaka, 30 dakika boyunca 37 ° C'de inkübe edildi ve fosfat tamponlu salin (PBS) ile yıkandı. DCF floresan yoğunluğu VICTOR kullanarak, uyarma 485 nm emisyon 535 nm'de ölçüldü TM önce ve 500 uM H eklenmesinden sonra X3 Multilabel Plate Reader (PerkinElmer, Waltham, MA, ABD), 2 O 2 her bir ilgili. 4.5. Trans Epitelyal Elektrik Direnci Ölçümü (TEER)
Bariyer fonksiyonlarının etkinliği, bir voltmetre kullanılarak TEER ölçülerek değerlendirildi [ 29 ].
Caco-2 hücreleri, daha önce tarif edildiği gibi Transwell polyester membran hücre kültürü eklerine (şeffaf PET membran: 0.4 um gözenek boyutu; BD Falcon) yerleştirildi [ 29 ]. Kültür ortamı her gün değiştirildi.
Hücre tohumlarının bütünlüğü, hücreler ekildiği için 14 ° günden 20 ° güne kadar izdihamda mono-tabakanın trans-epitelyal elektrik direncinin ölçülmesiyle izlendi. Kararlı bir değere ulaşıldığında, uygun oyuklardaki apikal bölmede BOS (1 ug / mL) ve CUR (1 ug / mL) ilave edilerek 24 saatlik bir ön işlem gerçekleştirildi.
TEER ölçümleri, oda sıcaklığında bir dengeleme süresinden sonra HBSS (Hanks Dengeli Tuz çözeltisi, Lonza, Milan, İtalya) içinde yapılmıştır [ 87 , 88 ]. 360-500 içinde TEER değeri olan hücreler Ω x cm 2 deneyler için kullanılmıştır [ 89 , 90 , 91 ].
Tedaviler apikal odaya ve enflamatuar uyaran (LPS 500 ng / mL) bazal odaya eklenmiştir. Millicell ® uyarımı kaydedilmiştir sonra çubuk bir çift elektrot bağlı ERS metre Millipore Corporation (Bedford, MA, ABD), 3, 6, 21 ve 24 saat sonra, verici ve alıcı odaları ve TEER varyasyonu sokulmuştur.
TEER, başlangıç değerine normalize edilen direnç yüzdesi olarak ifade edildi. 4.6. Yapışma Tayini
Bağırsak mukozasına iltihap kaynaklı lökosit infiltrasyonu simülasyonu, PBMC'nin Caco-2 hücrelerine hücre-hücre yapışması deneyi geliştirerek Seo ve meslektaşları tarafından yayınlanan yöntemi hafifçe değiştirdi [ 92 ]. Hematoksilin-eozin kombinasyonu basit ve etkili bir boyama yöntemi olarak seçilmiştir [ 93 ].
Kısaca, cam örtü slipleri (VWR, İtalya) etanol (Sigma Aldrich, Milan, İtalya) içinde ön yıkandı, bir alev kullanılarak sterilize edildi, jelatin (Sigma-Aldrich, Milan, İtalya) ile kaplandı ve 30 dakika süreyle inkübe edildi.
Daha sonra fazla jelatin uzaklaştırılmış ve Caco-2 hücreleri, 1.5 X 10 yoğunlukta tohumlanmıştır 5 de / hücreleri.
Birleşme noktasına ulaştıklarında, hücreler 24 saat boyunca BOS (1 ug / mL) ve CUR (1 μg / mL) ile ön işleme tabi tutuldu ve daha sonra 24 saat boyunca LPS 500 ng / mL'ye maruz bırakıldı.
PBMC (3 x 10 5 ) eş-kültürlenen 1 saat boyunca Caco-2 ile ve sonra PBS ile yıkandı.
Görüntüler tutulma Ti-s (Nikon, Floransa, İtalya) mikroskobu kullanılarak elde edildi. 4.7. İstatistiksel analiz
Tüm deneyler üç bağımsız tekrarda ( n = 6) iki kez yapıldı.
Gruplar arasındaki istatistiksel farklılıklar varyans analizi (tek yönlü ANOVA) ile belirlenmiştir. Değerler +/− standart sapma aralığında ifade edildi ve p <0.05 istatistiksel olarak anlamlı kabul edildi. Grafikler ve hesaplamalar GraphPrism ® (GraphPad Software, La Jolla, CA, ABD) kullanılarak yapıldı.
Şuraya git: 5. Sonuçlar
Şu anda, kronik bağırsak hastalıklarının tedavisi için evrensel etkinliğe sahip standart bir protokol mevcut değildir.
Kortikosteroidler genellikle hastalığın akut fazları sırasında reçete edilir. 5-aminosalisilatlar, immünomodülatör tedavi veya anti-TNF a antikorları, remisyon fazlarında, alternatif olarak veya kortikosteroidlerle birlikte kullanılabilir.
Tüm bu ilaçlar önemli yan etkileri ve oldukça düşük bir terapötik uyumu paylaşmaktadır. Bu nedenle, bu çalışmanın amacı, iyi bir güvenlik profiline sahip IBD'ler için yeni ve etkili tedavileri belirleme perspektifiyle yeni aktif ilkeleri değerlendirmektir.
İn vitro çalışmalar ve hayvan modelleri, inflamatuar mekanizmaların bağırsak seviyesindeki mevcut kavrayışına büyük ölçüde katkıda bulunmuştur. Bu mekanizmalar arasında membran bütünlüğü kaybı, ROS ve sitokin birikimi ve bağışıklık sisteminin, özellikle mast hücrelerine atıfta bulunarak hiper aktivasyonu yer alır.
IBD'lerin tedavisi için yeni ajanları değerlendirme girişiminde, tüm bu unsurları dikkate alan inflamatuar modellerin geliştirilmesi zorunludur.
Bu çalışmada, çeşitli insan hücre dizileri ve yenilikçi fakat onaylanmış yöntemler kullanılarak özgün bir in vitro yaklaşım önerilmiştir.
Esas olarak anti-enflamatuar aktivite ve geniş ve spesifik olmayan bir anti-oksidan etki ile karakterize edilen zerdeçal ve boswellia, sadece in vitro işlev bozukluğunu gösteren parametreleri modüle ederek IBD'lerin yönetimi için umut verici ajanlar olduğunu göstermiştir. kullanılan modeller (yani, sitokin salımı ve ROS üretimi), fakat aynı zamanda IBD'lerin (yani, bağırsak epitel bütünlüğünün kaybı ve bağışıklık hücresi infiltrasyonunun) klinik tezahüründe, bağırsak seviyesinde makul bir şekilde ulaşılabilen konsantrasyonda tanımlananlar.
Zerdeçal özütü, düşük konsantrasyonlarda bile anti-enflamatuar kapasiteye sahip olduğunu doğruladı ve bağırsak epitel bütünlüğüne karşı olağanüstü bir koruyucu ajan olarak ortaya çıktı. Boswellia özütü, önerilen modelde karşılaştırılabilir etkinlik gösterdi ve bu, güçlü antioksidan aktivite ile dengelenen daha düşük bir anti-enflamatuar etki sergiledi. Ayrıca, her bir ekstraktın kendine özgü etki mekanizması göz önüne alındığında, zerdeçal ve boswellia arasındaki ilişkinin sinerjik bir şekilde hareket edebilmesi, terapötik etkinliği arttırması muhtemeldir. Bu nedenle, gelecekteki çalışmaların bir ekstrakt karışımı kullanılarak yapılması umulmaktadır.
Bu çalışma, IBD'ler için bu bitkisel ilaçların gelişim sürecinde sadece bir başlangıç noktası olarak düşünülmelidir. Bu bağlamda, daha ileri moleküler ve farmakolojik araştırmalar yapmak ve bu fitoterapiklerin ana komplikasyonlarından biri olan iyi bir biyoyararlanımı garanti edebilecek özler ve formülasyon sağlamak gerekli olacaktır.
Şuraya git: Yardımcı Malzemeler
Ek veri dosyası için burayı tıklayın. (695K, zip)
Aşağıdakileri çevrimiçi olarak http://www.mdpi.com/1424-8247/11/4/126/s1 , Şekil S1'de bulabilirsiniz: TNF-α ( a ), IL-6 ( b ) ve IL-8 ( c ) PBMC içinde farklı konsantrasyonlarda CUR ve BOS tarafından indüklenen salım. İnflamatuar etki gözlenmedi; Şekil S2: LPS ile uyarılan PBMC'de farklı konsantrasyonlarda CUR ve BOS ile indüklenen TNF-a ( a ) ve IL-6 ( b ) salımı. Herhangi bir anti-enflamatuar etki gözlenmemiştir. ** kontrole karşı p <0.01; *** kontrole karşı p <0.001; Şekil S3: HMC-1.1 hücrelerinde CUR ve BOS tarafından indüklenen IL-6 ( a ) ve IL-10 ( b ) salımı. Herhangi bir etki gözlenmedi; Şekil S4: TNF-α ( a) ve PMA ile uyarılan HMC-1.1 hücrelerinde CUR ve BOS tarafından indüklenen IL-8 ( b ) salımı. Herhangi bir anti-enflamatuar etki gözlenmemiştir. ** kontrole karşı p <0.01; *** kontrole karşı p <0.001; Şekil S5: CUR ve BOS'un Caco-2 hücrelerinde ROS üretimi üzerindeki etkisi; Şekil S6: CUR ve BOS'un Caco-2 hücrelerinde TEER ölçümleri üzerindeki etkisi.
Şuraya git: Yazar Katkıları
Kavramsallaştırma, MM (Monica Montopoli) ve MB; Araştırma, PG, MM (Maddalena Marchi), VC, BDL ve DC; Metodoloji, BDL, PTKS ve DC; Yazma - orijinal taslak, PG ve VC; Yazma-gözden geçirme ve düzenleme, PTKS, EM, MM (Monica Montopoli) ve MB
Şuraya git: Finansman
Bu araştırma projesi herhangi bir dış finansman almamıştır. Saunders'ın laboratuvarındaki araştırmalar MRC program hibesi G1100356 / 1; Bianca De Leo, MRC Üreme Sağlığı Merkezi (G1002033) aracılığıyla verilen MRC tarafından finanse edilen bir doktora öğrencisi tarafından desteklenmiştir.
Şuraya git: Çıkar çatışmaları
Yazarlar çıkar çatışması bildirmemişlerdir.
Şuraya git: Referanslar
1. Mudter J. 2011 yılında enflamatuar barsak hastalıkları ile ilgili yenilikler. Dünya J. Gastroenterol. 2011; 17 : 3177'de açıklanmaktadır. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
2. Burisch J., Munkholm P. Enflamatuar bağırsak hastalığının epidemiyolojisi. Scand. J. Gastroenterol. 2015; 50 : 942-951. doi: 10.3109 / 00365521.2015.1014407. [ PubMed ] [ CrossRef ] [ Google Akademik ]
3. Xia B., Crusius J., Meuwissen S., Pena A. İnflamatuar bağırsak hastalığı: Tanım, epidemiyoloji, etiyolojik yönler ve immünogenetik çalışmalar. Dünya J. Gastroenterol. 1998; 4 : 446-458. doi: 10.3748 / wjg.v4.i5.446. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
4. Ng SC, Shi HY, Hamidi N., Underwood FE, Tang W., Benchimol EI, Panaccione R., Ghosh S., Wu JCY, Chan FKL, et al. 21. yüzyılda dünya çapında inflamatuar barsak hastalığı görülme sıklığı ve yaygınlığı: Populasyon temelli çalışmaların sistematik bir derlemesi Lancet. 2017; 390 : 2769-278. doi: 10.1016 / S0140-6736 (17) 32448-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
5. Chichlowski M., Westwood GS, Abraham SN, IL-10 Eksik Farelerde İnflamatuar Bağırsak Hastalığında ve İnflamasyonla İlişkili Kolorektal Neoplazide Mast Hücrelerinin Hale LP'nin Rolü. BİRİ PLOS. 2010; 5 : e12220. doi: 10.1371 / günlük.pone.0012220. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
6. O S.-H. İnflamatuar bağırsak hastalığında mast hücrelerinin ve ana sekretuar ürünlerinin anahtar rolü. Dünya J. Gastroenterol. 2004; 10 : 309-318. doi: 10.3748 / wjg.v10.i3.309. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
7. Hamilton MJ, Frei SM, Stevens RL İnflamatuar Bağırsak Hastalığında Çok Yönlü Mast Hücresi. Inflamm. Bağırsak Dış. 2014; 20 : 2364–2378. doi: 10.1097 / MIB.0000000000000142. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
8. Marcondes S., Bau EC, Antunes E., Dietrich CP, Nader HB, De Nucci G. Sıçanlarda sıçanlarda metotreksat ile heparin sentezinin inhibisyonu. Biochem. Pharmacol. 2002; 64 : 169-175. doi: 10.1016 / S0006-2952 (02) 01063-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
9. Goldsmith P., McGarity B., Duvarlar AF, Kilise MK, Millward-Sadler GH, Robertson DA Kortikosteroid tedavisi, inflamatuar bağırsak hastalığında mast hücre sayısını azaltır. Dig. Dis. Sci. 1990; 35 : 1409-1413. doi: 10.1007 / BF01536749. [ PubMed ] [ CrossRef ] [ Google Akademik ]
10. Fox CC, Moore WC, Lichtenstein LM İnsan bağırsak mast hücrelerinden sülfasalazin ve 5-aminosalisilik asit tarafından aracı salımının modülasyonu. Dig. Dis. Sci. 1991; 36 : 179-184. doi: 10.1007 / BF01300753. [ PubMed ] [ CrossRef ] [ Google Akademik ]
11. Neurath MF IBD için mevcut ve ortaya çıkan terapötik hedefler. Nat. Rev. Gastroenterol. Hepatol. 2017; 14 : 269-278. doi: 10.1038 / nrgastro.2016.208. [ PubMed ] [ CrossRef ] [ Google Akademik ]
12. Grevenitis P., Thomas A., Lodhia N. İnflamatuar Bağırsak Hastalığında Tıbbi Tedavi. Surg. Clin. Kuzeyinde. Am. 2015; 95 : 1159–1182'de açıklanmaktadır. doi: 10.1016 / j.suc.2015.08.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
13. Tsioutsiou EE, Giachetti D., Miraldi E., Governa P., Magnano AR, Biagi M. Fitoterapi ve cilt yara iyileşmesi. Acta. Vulnologica. 2016; 14 : 126-139. [ Google Akademik ]
14. Governa P., Baini G., Borgonetti V., Cettolin G., Giachetti D., Magnano AR, Miraldi E., Biagi M. Diyabet Yönetiminde Fitoterapi: Bir Gözden Geçirme. Moleküller. 2018; 23 : 105. doi: 10.3390 / moleküller23010105. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
15. Ng SC, Lam YT, Tsoi KKF, Chan FKL, Sung JJY, Wu JCY Sistematik inceleme: İnflamatuar bağırsak hastalığında bitkisel tedavinin etkinliği. Besin. Pharmacol. Ther. 2013; 38 : 854-863'te açıklanmaktadır. doi: 10.1111 / apt.12464. [ PubMed ] [ CrossRef ] [ Google Akademik ]
16. Avrupa İlaç Ajansı Curcuma longa L. Rhizoma ile ilgili EMA Değerlendirme Raporu . [(erişim tarihi 3 Temmuz 2018)];Çevrimiçi kullanılabilir: http://www.ema.europa.eu/docs/en_GB/...C500070703.pdf .
17. Mazieiro R., Frizon RR, Barbalho SM, de Alvares Goulart R. Curcumin İnflamatuar Bağırsak Hastalıklarını Tedavi Etme Olasılığı mı? J. Med. Gıda. 2018 DOI: 10.1089 / JMF.2017.0146. Basında. [ PubMed ] [ CrossRef ] [ Google Akademik ]
18. Neto FC, Marton LT, de Marqui SV, Lima TA, Curcuma Longa'dan Barbalho SM Curcuminoids: Crohn Hastalığı ve Ülseratif Kolit Tedavisinde Yeni Katkı Maddeleri? Crit. Rev. Food Sci. Nutr. 2018 Basında. [ PubMed ] [ Google Akademik ]
19. Ghosh S., Banerjee S., Sil PC Kurkumin'in iltihaplanma, diyabet ve nörodejeneratif hastalık üzerindeki yararlı rolü: Güncel bir güncelleme. Food Chem. Toxıcol. 2015; 83 : 111–124'te açıklanmaktadır. doi: 10.1016 / j.fct.2015.05.022. [ PubMed ] [ CrossRef ] [ Google Akademik ]
20. McCann MJ, Johnston S., Reilly K., Erkekler X., Burgess EJ, Perry NB, Roy NC Zerdeçal (Curcuma longa) ekstraktının çözünen taşıyıcı protein 22 A4 (SLC22A4) ve interlökin- Enflamatuar bağırsak hastalığı ile ilişkili 10 (IL-10) varyantı. Besinler. 2014; 6 : 4178-4190. doi: 10.3390 / nu6104178. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
21. Billerey-Larmonier C., Uno JK, Larmonier N., Midura AJ, Timmermann B., Ghishan FK, Kiela PR Kimyasal olarak uyarılmış kolitin fare modelinde diyet kurkumin'in koruyucu etkileri suşa bağlıdır. Inflamm. Bağırsak Dış. 2008; 14 : 780–793. doi: 10.1002 / ibd.20348. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
22. Larmonier CB, Midura-Kiela MT, Ramalingam R., Laubitz D., Janikashvili N., Larmonier N., Ghishan FK, Kiela PR Kurkumin ile nötrofil hareketliliğinin modülasyonu: İnflamatuar bağırsak hastalığı için çıkarımlar. Inflamm. Bağırsak Dış. 2011; 17 : 503-515. doi: 10.1002 / ibd.21391. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
23. Dünya Sağlık Örgütü. DSÖ Seçilmiş Şifalı Bitkiler Monografları Cilt 4. Dünya Sağlık Örgütü; Cenevre, İsviçre: 2009. [ Google Akademik ]
24. Algieri F., Rodriguez-Nogales A., Rodriguez-Cabezas ME, Risco S., Ocete MA, Galvez J. İnflamatuar Bağırsak Hastalığında Yeni Bir Strateji Olarak Botanik İlaçlar: Bir Gözden Geçirme. Arabulucular Inflamm. 2015; 2015 : 179616. doi: 10.1155 / 2015/179616. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
25. Hartmann RM, Fillmann HS, Martins MIM, Meurer L., Marroni NP Boswellia serrata, bir deneysel kolit modelinde yararlı anti-enflamatuar ve antioksidan özelliklere sahiptir. Phytother. Res. 2014; 28 : 1392–1398. doi: 10.1002 / ptr.5142. [ PubMed ] [ CrossRef ] [ Google Akademik ]
26. Hartmann RM, Morgan Martins MI, Tieppo J., Fillmann HS, Marroni NP Boswellia serrata'nın asetik asit tarafından indüklenen deneysel bir kolit sıçan modelinde antioksidan durum üzerindeki etkisi . Dig. Dis. Sci. 2012; 57 : 2038-2044. doi: 10.1007 / s10620-012-2134-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
27. Mudge E., Chan M., Venkataraman S., Zerdeçal Kökleri ve Takviyelerinde Kahverengi PN Curcuminoidler: Yöntem Optimizasyonu ve Validasyonu. Gıda Anal. Yöntemler. 2016; 9 : 1428-1435. doi: 10.1007 / s12161-015-0326-0. [ CrossRef ] [ Google Akademik ]
28. Chao I.-C., Wang CM, Li SP, Lin LG, Ye WC, Zhang QW Basınçlı Sıvı Ekstraksiyonu ve Yüksek Performanslı Sıvı Kromatografisi Kullanılarak Curcuma longa'nın Üç Curcuminoid ve Üç Uçucu Bileşeninin Eşzamanlı Miktarlandırılması. Moleküller. 2018; 23 : 1568. doi: 10.3390 / moleküller23071568. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
29. Catanzaro D., Rancan S., Orso G., Dall'Acqua S., Brun P., Giron MC, Carrara M., Castagliuolo I., Ragazzi E., Caparrotta L., vd. Boswellia serrata Oksidatif ve İnflamatuar Hasarlardan Bağırsak Epitel Bariyerini Korur. BİRİ PLOS. 2015; 10 : e0125375. doi: 10.1371 / journal.pone.0125375. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
30. Mannino G., Occhipinti A., Maffei ME Boswellia sacra Flueck (syn. B. carteri Birdw ) ve Boswellia'daki 3-O-Asetil-11-Keto-β-Boswellic Asit (AKBA) ve Diğer Boswellic Asitlerin Kantitatif Tayini serrata Roxb. Moleküller. 2016; 21 : 1329. doi: 10.3390 / moleküller21101329. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
31. Furrie E., Macfarlane S., Thomson G., Macfarlane GT İnsan kolonundaki ücretli geçişli reseptörler-2, -3 ve -4 ekspresyon paternleri ve mukozal ilişkili bakteriler tarafından düzenlenmesi. İmmünoloji. 2005; 115 : 565-574. doi: 10.1111 / j.1365-2567.2005.02200.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
32. Hausmann M., Kiessling S., Mestermann S., Webb G., Spottl T., Andus T., Scholmerich J., Herfarth H., Ray K., Falk W., et al. Geçiş ücreti benzeri reseptörler 2 ve 4, bağırsak iltihabı sırasında yukarı regüle edilir. Gastroenteroloji. 2002; 122 : 1987-2000. doi: 10.1053 / gast.2002.33662. [ PubMed ] [ CrossRef ] [ Google Akademik ]
33. Sandig H., Bulfone-Paus S. Mast hücrelerinde TLR sinyali: Ortak ve benzersiz özellikler. Ön. Immunol. 2012; 3 : 1–13. doi: 10.3389 / fimmu.2012.00185. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
34. Yüksek serbest Ca ile diyaliz zaman Balletta C. Lorenz D., Rummel A. Gerhard R., Bigalke H., Wegner F. İnsan Mast hücre çizgisi-1 (HMC-1) hücreleri, bir membran kapasitans artış sergiler 2 + ve GTPyS içeren hücre içi çözelti. EUR. J. Pharmacol. 2013; 720 : 227-236. doi: 10.1016 / j.ejphar.2013.10.022. [ PubMed ] [ CrossRef ] [ Google Akademik ]
35. Li L., Jin G., Jiang J., Zheng M., Jin Y., Lin Z., Li G., Choi Y., Yan G. Cornuside, MAPK'yı aşağı regüle ederek mast hücresi aracılı alerjik yanıtı inhibe eder. ve NF-κB sinyal yolakları. Biochem. Biophys. Res. Commun. 2016; 473 : 408-414. doi: 10.1016 / j.bbrc.2016.03.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
36. Mittal M., Siddiqui MR, Tran K., Reddy SP, Malik AB İnflamasyon ve doku hasarında reaktif oksijen türleri. Antioxid. Redoks Sinyali. 2014; 20 : 1126-1167. doi: 10.1089 / ars.2012.5149. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
37. Cocetta V., Catanzaro D., Borgonetti V., Ragazzi E., Giron MC, Governa P., Carnevali I., Monica M., Biagi M. Caco-2 Hücreleri Kullanan Bir In vitro Modelde Stres. Patx'ın Pat. Gıda. Nutr. Agric. 2019; 10 : 1–8. doi: 10.2174 / 2212798410666180808121328. [ PubMed ] [ CrossRef ] [ Google Akademik ]
38. Van De Walle J., Hendrickx A., Romier B., Larondelle Y., Schneider Y.-J. Caco-2 hücrelerinde inflamatuar parametreler: Uyarıcı doğanın, konsantrasyonun, kombinasyonun ve hücre farklılaşmasının etkisi. Toxıcol. Laboratuvar ortamında. 2010; 24 : 1441-1449. doi: 10.1016 / j.tiv.2010.04.002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
39. Huang Y., Li N., Liboni K., Neu J. Glutamine, NF-kappaB olmayan bir p50 mekanizması yoluyla Caco-2 hücrelerinde lipopolisakkarit kaynaklı IL-8 üretimini azaltır. Sitokin. 2003; 22 : 77–83. doi: 10.1016 / S1043-4666 (03) 00115-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
40. Abreu MT, Arnold ET, Thomas LS, Gonsky R., Zhou Y., Hu B., Arditi M. TLR4 ve MD-2 ekspresyonu, insan bağırsak epitel hücrelerinde bağışıklık aracılı sinyallerle düzenlenir. J. Biol. Chem. 2002; 277 : 20431-20437. doi: 10.1074 / jbc.M110333200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
41. Bocker U., Yezerskyy O., Feick P., Manigold T., Panja A., Kalina U., Herweck F., Rossol S., Şarkıcı M. V Bağırsak epitel hücre hatlarının lipopolisakkarite karşı duyarlılığı Toll ile ilişkilidir benzeri reseptör 4, ancak Toll benzeri reseptör 2 veya CD14 ekspresyonu değildir. Int. J. Colorectal Dis. 2003; 18 : 25–32. doi: 10.1007 / s00384-002-0415-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
42. Cario E., Rosenberg IM, Brandwein SL, Beck PL, Reinecker HC, Podolsky DK Lipopolisakkarit, Toll benzeri reseptörleri eksprese eden bağırsak epitel hücre hatlarında farklı sinyal yollarını aktive eder. J. Immunol. 2000; 164 : 966–972. doi: 10.4049 / jimmunol.164.2.966. [ PubMed ] [ CrossRef ] [ Google Akademik ]
43. Sanchez-Muñoz F., Dominguez-Lopez A., Yamamoto-Furusho JK İnflamatuar bağırsak hastalığında sitokinlerin rolü. Dünya J. Gastroenterol. 2008; 14 : 4280-4288. doi: 10.3748 / wjg.14.4280. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
44. Al-Sadi R., Boivin M., Ma T. Epitelyal sıkı bağlantı bariyerinin sitokin modülasyon mekanizması. Ön. Biosci. 2009; 14 : 2765-278. doi: 10.2741/3413. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
45. Ma TY, Boivin MA, Ye D., Pedram A., Caco-2 bağırsak epitel sıkı bağlantı bariyeri TNF-a modülasyonunun adı geçen HM Mekanizması: Miyozin hafif zincir kinaz protein ekspresyonunun rolü. Am. J. Physiol. Gastrointest. Karaciğer Physiol. 2005; 288 : G422 – G430. doi: 10.1152 / ajpgi.00412.2004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
46. Ye D., Ma I., Ma TY Bağırsak epitelyal sıkı bağlantı bariyerinin tümör nekroz faktörü-α modülasyonunun moleküler mekanizması. Am. J. Physiol. Gastrointest. Karaciğer Physiol. 2006; 290 : G496 – G504. doi: 10.1152 / ajpgi.00318.2005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
47. Ye D., Ma TY Miyozin hafif zincir kinaz gen aktivitesinin bazal ve tümör nekroz faktörü-a-kaynaklı düzenlemesine aracılık eden hücresel ve moleküler mekanizmalar. J. Celi. Mol. Med. 2008; 12 : 1331–1346. doi: 10.1111 / j.1582-4934.2008.00302.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
48. Mankertz J., Amasheh M., Krug SM, Fromm A., Amasheh S., Hillenbrand B., Tavalali S., Fromm M., Schulzke JD TNFα epitel HT-29 / B6'da claudin-2 ekspresyonunu yukarı doğru düzenler fosfatidilinositol-3-kinaz sinyali yoluyla hücreler. Hücre. Doku Arş. 2009; 336 : 67-77. doi: 10.1007 / s00441-009-0751-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
49. Schmitz H., Fromm M., Bentzel CJ, Scholz P., Detjen K., Mankertz J., Bode H., Epple HJ, Riecken EO, Schulzke JD Tümör nekroz faktörü-α (TNFa) epitelyal bariyeri düzenler. insan bağırsak hücre hattı HT-29 / B6. J. Celi. Sci. 1999; 112 : 137-146. [ PubMed ] [ Google Akademik ]
50. Gitter AH, Bendfeldt K., Schulzke JD, Fromm M. Spontan ve TNF-a'nın neden olduğu tek hücreli apoptozun neden olduğu epitelyal bariyerde sızıntılar. FASEB J. Kapalı. Publ. Besledi. Am. Soc. Tecrübe. Biol. 2000; 14 : 1749–1753. doi: 10.1096 / fj.99-0898com. [ PubMed ] [ CrossRef ] [ Google Akademik ]
51. Florian P., Schoneberg T., Schulzke JD, Fromm M., Gitter AH Tek hücreli epitel kusurları, fonksiyonel sıkı kavşaklara sahip bir aktinomiyozin kese mekanizması ile hızla kapanır. J. Physiol. 2002; 545 : 485-499. doi: 10.1113 / jphysiol.2002.031161. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
52. Bruewer M., Luegering A., Kucharzik T., Parkos CA, Madara JL, Hopkins AM, Nusrat A. Proinflamatuar sitokinler, apoptozdan bağımsız mekanizmalar ile epitelyal bariyer fonksiyonunu bozar. J. Immunol. 2003; 171 : 6164-6172. doi: 10.4049 / jimmunol.171.11.6164. [ PubMed ] [ CrossRef ] [ Google Akademik ]
53. Marano CW, Lewis SA, Garulacan LA, Soler AP, Mullin JM Tümör nekroz faktörü-α, insan bağırsak epitel hücre çizgisi olan CACO-2 BBE'nin sıkı birleşimi boyunca sodyum ve klorür iletkenliğini arttırır. J. Membr. Biol. 1998; 161 : 263-274. doi: 10.1007 / s002329900333. [ PubMed ] [ CrossRef ] [ Google Akademik ]
54. Ma TY, Iwamoto GK, Hoa NT, Akotia V., Pedram A., Boivin MA, Bahsedilen HM TNF-a'nın neden olduğu bağırsak epitelyal sıkı bağlantı geçirgenliğinde artış NF-kappa B aktivasyonunu gerektirir. Am. J. Physiol. Gastrointest. Karaciğer Physiol. 2004; 286 : G367 – G376. doi: 10.1152 / ajpgi.00173.2003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
55. Lee SH Sıkı kavşak ile bağırsak geçirgenliği regülasyonu: İnflamatuar bağırsak hastalıklarına etkisi. Intest. Res. 2015; 13 : 11-18. doi: 10.5217 / ir.2015.13.1.11. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
56. Tazuke Y., Drongowski RA, Teitelbaum DH, Coran AG İnterlökin-6, bir insan enterosit hücre kültürü modelinde sıkı bağlantı geçirgenliğini ve hücre içi fosfolipid içeriğini değiştirir. Pediatr. Surg. Int. 2003; 19 : 321–325. doi: 10.1007 / s00383-003-1003-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
57. Suzuki T., Yoshinaga N., Tanabe S. Interleukin-6 (IL-6), bağırsak epitelinde claudin-2 ekspresyonunu ve sıkı bağlantı geçirgenliğini düzenler. J. Biol. Chem. 2011; 286 : 31263–31271. doi: 10.1074 / jbc.M111.238147. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
58. Wang L., Srinivasan S., Theiss AL, Merlin D., Sitaraman S. V İnterlökin-6, bağırsak epitel hücrelerinde keratin ekspresyonunu indükler: İnterlökin-6 ile indüklenen bariyer fonksiyon değişikliklerinde keratin-8'in potansiyel rolü. J. Biol. Chem. 2007; 282 : 8219–8227. doi: 10.1074 / jbc.M604068200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
59. El-Sadi R., Ye D., Boivin M., Guo S., Hashimi M., Ereifej L., Ma TY İnterlökin-6 Bağırsak Epitel Sıkı Kavşağı Geçirgenliğinin Modülasyonu, Claudin-2'nin JNK Yolu Aktivasyonu Aracılığıyla Gen. BİRİ PLOS. 2014; 9 : e85345. doi: 10.1371 / günlük.pone.0085345. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
60. Hsieh C.-J., Hall K., Ha T., Li C., Krishnaswamy G., Chi DS Baicalein, insan mast hücrelerinden IL-1β- ve TNF-a-kaynaklı inflamatuar sitokin üretimini, NF-pathB yolu. Clin. Mol. Alerji. 2007; 5 : 5. doi: 10.1186 / 1476-7961-5-5. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
61. Yano K., Nakao K., Sayama K., Hamasaki K., Kato Y., Nakata K., Ishii N., Butterfield JH, Galli SJ HMC-1 insan mast hücre hattı, hepatosit büyüme faktörü reseptörünü c ifade eder. -tanışmak. Biochem. Commun. 1997; 239 : 740-745. doi: 10.1006 / bbrc.1997.7546. [ PubMed ] [ CrossRef ] [ Google Akademik ]
62. Kruger-Krasagakes S., Moller A., Kolde G., Lippert U., Weber M., Henz BM İnterlökin-6'nın insan mast hücreleri ve bazofilik hücreler tarafından üretilmesi. J. Invest. Dermatol. 1996; 106 : 75–79. doi: 10.1111 / 1523-1747.ep12327815. [ PubMed ] [ CrossRef ] [ Google Akademik ]
63. Kim JY, Ro JY Phorbol miristat asetat ile uyarılan HMC-1 hücrelerinden üretilen reaktif oksijen türleri tarafından üretilen sitokinlerin sinyal yolu. Scand. J. Immunol. 2005; 62 : 25–35. doi: 10.1111 / j.1365-3083.2005.01636.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
64. Jijon HB, Panenka WJ, Madsen KL, Parsons HG MAP kinazlar, posttranskripsiyonel bir mekanizma yoluyla bağırsak epitel hücreleri tarafından IL-8 salgılanmasına katkıda bulunur. Am. J. Physiol. Hücre. Physiol. 2002; 283 : C31 – C41. doi: 10.1152 / ajpcell.00113.2001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
65. Kucharzik T., Hudson JT, Lügering A., Abbas JA, Bettini M., JG Gölü, Evans ME, Ziegler TR, Merlin D., Madara JL, Williams IR İnsan IL-8 üretiminin bağırsak epitel tetikleyicileri tarafından akut indüksiyonu mukozal yaralanma olmadan nötrofil infiltrasyonu. Bağırsak. 2005; 54 : 1565–1572. doi: 10.1136 / bağırsak.2004.061168. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
66. DeForge LE, Kenney JS, Jones ML, Warren JS, Remick DG Lipopolisakkarit (LPS) uyarılmış insan tam kanında IL-8'in bifazik üretimi. Anti-tümör nekroz faktörü ve anti-IL-1 antikorları kullanılarak LPS- ve sitokin ile uyarılan bileşenlerin ayrılması. J. Immunol. 1992; 148 : 2133-2141'de açıklanmaktadır. [ PubMed ] [ Google Akademik ]
67. Osawa Y., Nagaki M., Banno Y., Brenner DA, Asano T., Nozawa Y., Moriwaki H., Nakashima S. Kinaz / Akt Yolakları İnsan Hepatositlerinde Hücre Apoptozunu Engeller. Infect. Immun. 2002; 70 : 6294-6301. doi: 10.1128 / IAI.70.11.6294-6301.2002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
68. Madsen KL, Lewis SA, Tavernini MM, Hibbard J., Fedorak RN Interleukin 10, T84 tek tabakalı bariyer bütünlüğünün sitokin kaynaklı bozulmasını önler ve klorür salgısını sınırlar. Gastroenteroloji. 1997; 113 : 151-159. doi: 10.1016 / S0016-5085 (97) 70090-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
69. Loren V., Cabre E., Ojanguren I., Domenech E., Pedrosa E., Garcia-Jaraquemada A., Manosa M., Manye J. Interleukin-10, p38 yoluyla Kortikosteroidlerin Varlığında Bağırsak Epitel Bariyerini Geliştirir Caco-2 Monolayerlerinde MAPK Aktivitesi: Ülseratif Kolitte Steroid Duyarlılığı İçin Olası Bir Mekanizma. BİRİ PLOS. 2015; 10 : e0130921. doi: 10.1371 / günlük.pone.0130921. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
70. Wang Q., Hasselgren P.-O. Isı şoku yanıtı septik farelerde bağırsak geçirgenliğini azaltır: İnterlökin-10'un potansiyel rolü. Am. J. Physiol. Regul. İntegr. Zorunlu. Physiol. 2002; 282 : R669-R676. doi: 10.1152 / ajpregu.00606.2001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
71. Güneş X., Yang H., Burun K., Burun S., Haxhija EQ, Koga H., Feng Y., Teitelbaum DH Toplam fare modelinde bağırsak mukozal IL-10 ekspresyonunda azalma ve bağırsak bariyeri fonksiyonunda azalma parenteral beslenme. Am. J. Physiol. Gastrointest. Karaciğer Physiol. 2008; 294 : G139-G147. doi: 10.1152 / ajpgi.00386.2007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
72. Hewlings SJ, Kalman DS Curcumin: İnsan Sağlığına Etkilerinin İncelenmesi. Gıdalar. 2017; 6 : 92. doi: 10.3390 / gıdalar6100092. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
73. Jurenka JS Curcuma longa'nın önemli bir bileşeni olan curcumin'in anti-inflamatuar özellikleri: Klinik öncesi ve klinik araştırmaların gözden geçirilmesi. Altern. Med. Rev. 2009; 14 : 141-153. [ PubMed ] [ Google Akademik ]
74. Epstein J., Docena G., MacDonald TT, Sanderson IR Curcumin p38 mitojenle aktifleştirilen protein kinaz aktivasyonunu baskılar, IL-1beta ve matris metalloproteinaz-3'ü azaltır ve iltihaplı bağırsak hastalığı olan çocukların ve yetişkinlerin mukozasında IL-10'u arttırır. . Br. J. Nutr. 2010; 103 : 824-832'de açıklanmaktadır. doi: 10.1017 / S0007114509992510. [ PubMed ] [ CrossRef ] [ Google Akademik ]
75. Aggarwal BB, Gupta SC, Sung B. Curcumin: Oral olarak biyoyararlanabilen bir TNF ve diğer pro-enflamatuar biyobelirteçler. Br. J. Pharmacol. 2013; 169 : 1672-1692. doi: 10.1111 / bph.12131. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
76. Zhang N., Li H., Jia J., He M. Curcumin'in ovalbumin kaynaklı alerjik rinit faresinde mast hücresi aracılı alerjik yanıtlar üzerindeki anti-inflamatuar etkisi. Hücre. Immunol. 2015; 298 : 88-95. doi: 10.1016 / j.cellimm.2015.09.010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
77. Mollazadeh H., Cicero AFG, Blesso CN, Pirro M., Majeed M., Sahebkar A. Kurkumin tarafından bağışıklık modülasyonu: İnterlökin-10'un rolü. Crit. Rev. Food Sci. Nutr. 2017: 1-13. doi: 10.1080 / 10408398.2017.1358139. [ PubMed ] [ CrossRef ] [ Google Akademik ]
78. Larmonier CB, Uno JK, Lee K.-M., Karrasch T., Laubitz D., Thurston R., Midura-Kiela MT, Ghishan FK, Sartor RB, Jobin C., vd. IL-10 eksik farelerde diyet kurkumininin Th-1 güdümlü kolit üzerindeki sınırlı etkileri, IL-10'a bağlı bir koruma mekanizması olduğunu düşündürmektedir. Am. J. Physiol. Gastrointest. Karaciğer Physiol. 2008; 295 : G1079 – G1091. doi: 10.1152 / ajpgi.90365.2008. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
79. Ammon HPT Boswellia serrata özleri ve boswellic asitler ile bağışıklık sisteminin modülasyonu. Phytomedicine. 2010; 17 : 862-867. doi: 10.1016 / j.phymed.2010.03.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
80. Gayathri B., Manjula N., Vinaykumar KS, Lakshmi BS, Balakrishnan A. Boswellia serrata ekstraktından saf bileşik, insan PBMC'lerinde ve fare makrofajlarında TNFa, IL-1beta, NO ve MAP kinazların inhibisyonu yoluyla anti-enflamatuar özellik sergiler. Int. Immunopharmacol. 2007; 7 : 473-482. doi: 10.1016 / j.intimp.2006.12.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
81. Fan J.-P., He C.-H. Diospyros kaki'nin yapraklarındaki üç ana biyoaktif triterpen asidin yüksek performanslı sıvı kromatografi yöntemiyle eşzamanlı olarak ölçülmesi. J. Pharm. Biomed. Anal. 2006; 41 : 950–956. doi: 10.1016 / j.jpba.2006.01.044. [ PubMed ] [ CrossRef ] [ Google Akademik ]
82. Panda SK, Ravindran B. İnsan PBMC'lerinin İzolasyonu. Biyo-Protokolü. 2013; 3 : e323. doi: 10.21769 / BioProtoc.323. [ CrossRef ] [ Google Akademik ]
83. Sundström M., Vliagoftis H., Karlberg P., Butterfield JH, Nilsson K., Metcalfe DD, Nilsson G. Bir insan mast hücre hattının iki varyantının c- de farklı mutasyonlarla fonksiyonel ve fenotipik çalışmaları kit proto-onkogen. İmmünoloji. 2003; 108 : 89-97. doi: 10.1046 / j.1365-2567.2003.01559.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
84. Sambuy Y., De Angelis I., Ranaldi G., Scarino ML, Stammati A., Zucco F.Bağırsak bariyerinin bir modeli olarak Caco-2 hücre hattı: Hücre ve kültüre bağlı faktörlerin Caco- 2 hücre fonksiyonel özellikleri. Hücre. Biol. Toxıcol. 2005; 21 : 1–26. doi: 10.1007 / s10565-005-0085-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
85. Dall'Acqua S., Catanzaro D., Cocetta V., Igl N., Ragazzi E., Giron MC, Cecconello L., Montopoli M. psi taraxasterol 3-O-miristat ve arnidiol 3-O- epitelyal bağırsak bariyerinde Calendula officinalis'ten izole miristat. Fitoterapia. 2016; 109 : 230-235. doi: 10.1016 / j.fitote.2016.01.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
86. Cocetta V., Borgonetti V., Ragazzi E., Cecilia Giron M., Catanzaro D., Cecilia M., Governa P., Carnevali I., Biagi M., Montopoli M. Probiyotikler ve Bitkisel Ekstraktların Sabit Bir Kombinasyonu İnflamatuar Stresin Bağırsak Bariyeri Bozukluğunu Azaltır. Preprints. 2017; 2017120199 [ PubMed ] [ Google Akademik ]
87. Liu T., Chang L.-J., Uss A., Chu I., Morrison RA, Wang L., Prelusky D., Cheng K.-C., Li C. Proteinin Caco-2 üzerindeki etkisi soğurma projeksiyonu ve akış akış substratı tanımlama için düşük kütle dengesi bileşiklerinin geçirgenliği J. Pharm. Biomed. Anal. 2010; 51 : 1069-1077. doi: 10.1016 / j.jpba.2009.12.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
88. Vidau C., Brunet J.-L., Badiou A., Belzunces LP Fenilpirazol insektisitler, insan epitel hücre modeli Caco-2'deki hücresel enerji tedarikindeki mekanizmaları değiştirerek sitotoksisiteyi indükler. Toxıcol. Laboratuvar ortamında. 2009; 23 : 589-597. doi: 10.1016 / j.tiv.2009.01.017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
89. Hubatsch I., Ragnarsson EGE, Artursson P.Caco-2 mono tabakalarında ilaç geçirgenliğinin belirlenmesi ve ilaç absorpsiyonunun tahmini. Nat. Protoc. 2007; 2 : 2111. doi: 10.1038 / nprot.2007.303. [ PubMed ] [ CrossRef ] [ Google Akademik ]
90. Natoli M., Leoni BD, D'Agnano I., Zucco F., Felsani A. İyi Caco-2 hücre kültürü uygulamaları. Toxıcol. Laboratuvar ortamında. 2012; 26 : 1243–1246. doi: 10.1016 / j.tiv.2012.03.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
91. Srinivasan B., Kolli AR, Esch MB, Abacı HE, Shuler ML, Hickman JJ TEER in vitro bariyer model sistemleri için ölçüm teknikleri. J. Lab. Otom. 2015; 20 : 107-126. doi: 10.1177 / 2211068214561025. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
92. Bir tetrahidroksiklcone olan Seo WY, Youn GS, Choi SY, Park J. Butein, HaCaT keratinositlerinde pro-inflamatuar yanıtları bastırır. BMB Rep.2015 ; 48 : 495-500. doi: 10.5483 / BMBRep.2015.48.9.259. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
93. Chan JKC Tanısal Cerrahi Patolojide Hematoksilin-Eozin Lekesinin Harika Renkleri. Int. J. Surg. Pathol. 2014; 22 : 12–32. doi: 10.1177 / 1066896913517939. [ PubMed ] [ CrossRef ] [ Google Akademik ]Yorum yap
-
BOSWELLİA İle Morbus Kron Ve Üşüme
Yorum yap
-
Yorum yap
-
BOSWELLİA İle Ürtikeryal Vaskülit
BOSWELLİA İle Üşüme Ve Vücut Isısı
Yorum yap
-
BOSWELLİA İle Romatoid Artrit, Enfeksiyon Ve Üşüme
Yorum yap
-
BOSWELLİA İle Varis
Yorum yap
-
BOSWELLİA İle Üşüme
Yorum yap
-
Enfeksiyondan Korunma Yolları Ayak Ağrılarına Ne İyi Gelir Yüksek Tansiyondan Nasıl Kurtulurum.
Yorum yap
-
Kansızlık Nedir Ne İyi Gelir Üşüme Sebepleri Nelerdir Boswellia Nedir
Yorum yap
-
Boswellia Nedir- Boswellianın Faydaları Nelerdir
Yorum yap
-
Alerji Nedir- Alerjik Reaksiyonlar İçin Ne Yapılmalıdır
Yorum yap
-
Boswellia Hangi Rahatsızlıklara İyi Gelir- Boswellia Forte
Yorum yap

Yorum yap