Duyuru

Collapse
No announcement yet.

Sülforafan, Sulforafane, Sulforaphane, brokoli, broccoli, Brassica oleracea*L.*var Italica

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Sülforafan, Sulforafane, Sulforaphane, brokoli, broccoli, Brassica oleracea*L.*var Italica

    NADH Nedir ve Ne İşe Yarar?
    Vücut enerjisinin üretilebilmesi için oksijene, glikoza ve NADH’a gereksinim vardır. Oksijen ve glikozun eksikliği gibi NADH ‘nın eksikliği de hücrelerin ölümüne yol açar. Yaşın ilerlemesiyle hücrelerdeki enerji seviyesi düşer. Belli bir oranın altına düştüğünde ise hücreler ölür ve vücudun bir çok hastalığa yakalanma olasılığı artar. Nicotinamide adenine dinucleotide (NADH), B3 vitamininin öncü maddesi olan nicotinamid’den sentezlenir. Hücrelerin en önemli enerji taşıyıcısı olan ATP üretiminde görev alırlar. Çok sayıda kimyasal reaksiyonun gerçekleşebilmesi için NADH’e gereksinim vardır. Bir hücrenin NADH içeriği ne kadar fazlaysa o kadar çok enerji üretebilir.

    NADH (Nikotinamid Adenin Dinükleotid) hücrelerin enerji üretim merkezi gibi çalışan mitokondrilerde önemli fonksiyonlar üstlenir.
    Sağlıklı bir vücut ihtiyacı kadar NADH’yı üretebilir fakat bazen kronik yorgunluk sendromu gibi durumlarda NADH düzeyi azalabilir.
    NADH 100 trilyon hücrenin her birinde enerji üretimi için gerekli olan bir koenzimdir.
    NADH sadece yenilen besinlerle dışardan alınır.
    Yaşın ilerlemesiyle birlikte hücrelerdeki düzeyinin düşmesinden dolayı NADH’ya olan gereksinim daha fazla artar.
    NADH kırmızı et, beyaz et ve balıklarda bulunur. Besin yoluyla alınan NADH’ın çok az bir bölümü vücudda kullanıldığı için ek destek olarak da alınabilir.
    Enerji üretimindeki kritik görevi yanında hücre içindeki birçok önemli kimyasal reaksiyonu tetikleyici işlevi de vardır. 1.000 ‘den fazla metabolik reaksiyon NADH tarafından tetiklenir ve kontrol edilir.
    NADH serotonin, dopamin ve norepinefrin gibi nörotransmitterlerin oluşturulmasında önemli rol oynar. Çalışmalar NADH’nın norepinefrin, serotonin ve dopamin gibi nörotransmitterlerin üretimini hızlandırarak beyin kimyasallarını düzenlediğini göstermektedir.

    NADH Ne İşe Yarar?
    •NADH takviyesinin alımı hücrelerin daha çok güç üretmesine ve daha fazla enerjiye sahip olmasını sağlar.
    •Fiziksel ve zihinsel dayanlıklığı artırır. Atletik performansı yükseltir.
    •Kronik yorgunluk sendromuna karşı mücadelede yardımcı olur. Yorgunluk ve depresiflik gibi durumlarda NADH alımı kişinin kendisini enerjik hissetmesini sağlayabilir.
    •Nutritional Supplement Educational Center; enerji düzeylerini artırmada ve yorgunlukla mücadelede NADH’nın yardımcı bir besin olarak kullanılabileceğini belirtmiştir.
    •NADH hücresel enerji artışını gerçekleştirir. Enerji içeceği olarak kullanılan ürünler hücresel enerji artışını sağlamaz.
    •Hücreleri korur ve yeniler. Bağışıklık sisteminin desteklenmesi ve DNA hasarlarının onarılmasında etkilidir.
    •Dopamin ve norepinefrin gibi nörotransmitterlerin üretimini uyarır, erkek ve kadınlarda libido artışını gerçekleştirir.
    •İnsanın kendini mutlu hissetmesini sağlayan serotonin hormonunun üretiminde etkilidir.
    •Bellek performansını yükseltir, konsantrasyon ve dikkati geliştirir.
    •Kolesterol ve glikoz seviyelerini düzenler.
    •Ön araştırmalar NADH’nın kardiyovasküler sorunları önlemeye yardımcı olabileceğini göstermektedir.
    Geriatric Nephrology and Urology adlı derginin 1998 ocak sayısında yayınlanan araştırmada 10 hafta boyunca farelere NADH verilmiş ve araştırma sonunda kan basıncı ve LDL kolesterol seviyesinde düşüş tespit edilmiştir.
    •NADH takviyeleri Parkinson ya da Alzheimer hastalığı ile ilişkili semptomları azaltabilir.
    .................................................. ....................................

    Sülforafan Nrf2 üretimini artırır, Nrf2 KİNON Oksidoreduktaz, hem oksijenaz, tiyoredoksin redüktaz ve Glutatyon S - Transferaz üretimini artırır.
    1. Kinon Oksidoreduktaz;
    NAD, NAD+ ve NADH indirger ve tekrar kullanıma sunar.
    2. Nrf2 p53 Genini satabil hale getirir ve daha fonksiyonel hale getirir.
    3. γ-glutamilsisteinı (γ-L-Glutamil-L-sisteinı) yukarı regule eder ve Glutatiyonun bir öncülüdür ve glutatyon oluşturmak için glutatiyon sentaz (GSH S Transferaz) tarafından kullanılır.
    4. Heme Oksijenaz Karbon dioksit, Demir ve Bilurubini indirgeyerek Mitokondirin ve hücrede birikmesini önler ve hücreyi temizler.
    5. Sülforafan yapısı dokusu bozulan hücreleri otofaji ile yakarak enerjiye dönüştürür ve kanser olma riskini ortadan kaldırır.
    6. Tiyoredoksin Redüktaz Enzimi Apoptozu önler ve böylece kanseri tetikler, SÜLFORAFAN Tiyoredoksin Redüktaz Enzimini inhibe eder ve böylece kanseri önler. Tiyoredoksin Redüktaz Enzimi Sistein ve tiyol (kükürtlü amino asit ve kükürtlü aminosit artıkları) artıklarını indirger (temizler) ve böylece ROS 'u önleyerek bağışıklık sistemini güçlendirir. Tioredoksinler, NADPH'ye bağlı bir reaksiyonda flavoenzim tioredoksin redüktaz tarafından indirgenmiş durumlarında korunur .

    Kinon Oksidoreduktaz NADHP yi NADH ya indirger ve yeniden NADH oluşumunu sağlar. Yani artık Ekstradan NADP (KOENZİM), NADP+ İse nadp nin oksitlenmiş halidir. nikotinamid adenin dinükleotid [NAD(H)] ve nikotinamid adenin dinükleotid fosfat [NADP(H)] aynı anda enerji dönüştürücüler, sinyal molekülleri ve redoks çiftleri olarak işlev görür.

    Çalışmamızın amacı, AD, PD ve MS dahil olmak üzere nörodejeneratif hastalıklarda SFN'nin etkinliğini göstermektir. Bu derlemeyi yazmak için, “sulforaphane” ve “Alzheimer hastalığı” (35 makale), “sulforaphane” ve “Parkinson hastalığı” (33 makale) ve “sulforaphane” ve “Multiple” anahtar kelimelerini kullanarak bir PubMed araması yaptık. skleroz” (13 makale). Nörodejeneratif hastalıkların yönetiminde SFN'nin etkilerini bildiren 2005-2020 yılları arasında yayınlanan makaleleri inceledik.

    Git: 2. SFN ve Moleküler Hedefi
    SFN, moleküler hedef nükleer faktör eritroid 2 ile ilgili faktör 2 (Nrf2) ile kükürt açısından zengin bir bileşiktir. Ayrıca, nöroinflamasyon, oksidatif stres, mitokondriyal disfonksiyon, eksitotoksisite ve nöronal hasar gibi nörodejeneratif hastalıklarda meydana gelen çeşitli patolojik olaylar Nrf2'yi içerebilir [ 8 ]. Gerçekten de, Nrf2 ekspresyonu, nikotinamid adenin dinükleotid fosfat kinon oksidoredüktaz 1 (NQO-1), heme oksijenaz 1 (HO-1), GSH S-transferaz gibi detoksifiye edici ve antioksidan etkiye sahip sitoprotektif enzimler aracılığıyla hareket eden SFN tarafından düzenlenebilir. ve tioredoksin redüktaz, böylece oksidatif strese karşı koyar [ 10 ]. Nrf2, insanlarda NFE2L2 tarafından kodlanan, başlık ve yaka yapısına sahip, temel bir transkripsiyon faktörü lösin fermuarlı (bZIP)' dir.gen. Ek olarak, Nrf2, redoks dengesi ve hücresel detoksifikasyon yanıtlarının ana düzenleyicisini temsil eder, ayrıca hücresel savunma mekanizmasını uyarır [ 11 ]. Nrf2 sinyal yolu, antioksidan tepki elemanlarını (ARE) ve Kelch benzeri ECH ile ilişkili protein 1'i (Keap1) içerir. Fizyolojik koşullarda, Keap1, ubikuitin-proteazom sistemi (UPS) yoluyla Nrf2'nin yaygınlaştırılmasını ve parçalanmasını kolaylaştırmak için sistein kalıntıları sayesinde bir sensör redoks görevi gören sitoplazmada Nrf2'yi sekestre eder [ 12 , 13 ]. Daha sonra, Nrf2, Keap1'in sistein kalıntılarının oksidasyonunun meydana geldiği çekirdeğe yer değiştirir ve ardından bunun stabilizasyonu [ 14 , 15 , 16]]. Çekirdekte, Nrf2, muskuloaponeurotik fibrosarkom onkogen homologu (Maf) ile etkileşime girerek, sitoprotektif genlerin transkripsiyonel düzenlenmesinde anahtar rol oynayan ARE'yi aktive eder ve böylece bir nöroprotektif etki gösterir [ 17 ]. Bunun yerine, oksidatif stres ve reaktif oksijen türlerinin (ROS) veya reaktif nitrojen türlerinin (RNS) üretimi gibi stres koşullarında, Nrf2 ubiquitination ve degradasyon bloke edilir [ 13 ]. Bu nedenle, Keap1/Nrf2/ARE yolu aracılığıyla ve özellikle Nrf2 aktivasyonunu artırarak SFN, GSH peroksidaz 1, NQO-1, HO-1 ve gama-glutamilsistein sentetaz gibi moleküllerin yukarı regülasyonu yoluyla oksidatif strese karşı koymaya katkıda bulunabilir. GSH sentezini kontrol eden [ 18 , 19 ]].

    Sonuçlar
    Bu derlemenin amacı, AD, PD ve MS dahil olmak üzere ana nörodejeneratif hastalıklarda SFN'nin etkinliğini tanımlayan deneysel çalışmalara genel bir bakış sağlamaktır. Çalışmaların sonuçları, SFN'nin moleküler hedefi Nrf2 aracılığıyla antioksidan, anti-inflamatuar ve anti-apoptotik özelliklere sahip genleri ve molekülleri aktive ederek faydalı bir rol oynayabileceğini ileri sürdü. Bu nedenle, düşük nörotoksisitenin yanı sıra etkilerine bağlı olarak SFN, nörodejeneratif hastalıkların yönetimi için mevcut tedavilere destek olarak faydalı olabilir. Ayrıca, bazı mekanizmalar hala tam olarak bilinmemekle birlikte, Nrf2, AD, PD ve MS gibi nörodejeneratif hastalıkların ilerlemesine karşı koyabilecek yeni stratejiler geliştirmek için yararlı bir terapötik hedef olarak kabul edilebilir.

    Sülforafan etkileri ve uygulama alanları
    ASTIM ve ALERJİK RİNİT'de sülforafan
    CALİFORNİA Üniversitesi'nde araştırmacılar, çalışma lideri Marc Riedl'e göre "brokolinin insanlarda antioksidan tepkisini biyolojik olarak geliştirdiğini" buldular. Test deneklerinin brokoli yedikten sonra burunlarında üç kata kadar daha fazla antioksidan enzim bulundu. Sülforafan, solunum yollarını iltihaplanmadan koruyan enzimlerin oluşumunu destekleyerek astım ve saman nezlesine karşı yardımcı olabilir. Bu nedenle, doğal bir anti-inflamatuar olarak ve solunum problemlerinin tedavisinde kullanılabilir - örneğin nazal mukozanın alerjik iltihabına, astıma veya kronik obstrüktif akciğer hastalığına (KOAH) karşı - sözde sigara içenlerin akciğeri. (Web'deki makale: Astım: Brokoli korurOral Sulforaphane, insan üst solunum yolundaki Faz II antioksidan enzimlerini arttırır )

    ALZEİMER
    Almanya'da yaklaşık 1 milyon insan Alzheimer hastalığından etkileniyor. Önleme ve tedavide bir atılım yapılmadığı takdirde, bunama hastası sayısı 2050 yılına kadar 3 milyona çıkacak (kaynak, deutsche-alzheimer.de ). Bir çalışma, sülforafanların Alzheimer hastalığına karşı koruma ile ilişkili belirli reseptörler üzerindeki etkilerini araştırdı. (Araştırma: Sülforafan Tedavisinin Alzheimer Hastalığında Faydalı Etkileri… )

    ARTROZ
    NORWICH'teki East Anglia Üniversitesi'nden İngiliz bilim adamları tarafından sülforafan ve osteoartrit arasındaki bağlantı üzerine yapılan bir laboratuvar çalışması, sülforafanın eklemlerin yok edilmesinden sorumlu enzimleri bloke ettiğini gösterdi. Bu, eklemlerdeki kıkırdak yıkımını yavaşlatırken aynı zamanda iltihaplanma gelişimini de engeller. ( "Artroza karşı brokoli yemek" ilaç gazetesindeki makale ; İngilizce: Brokoli yemek artrite karşı koruyucu olabilir )

    Bir grup araştırmacı, sülforafanın eklemlerdeki inflamatuar yanıtlar üzerindeki etkilerini inceledi . Maddenin kıkırdağı parçalayan enzimlerin oluşumunu engellediği gösterildi. Böylece sülforafan, artrit ile ilişkili kıkırdak yıkımını engellemeye yardımcı olur. Bilim adamları, hastalığın önlenmesi ve tedavisi için brokoli veya sülforafan özünü önermektedir. (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/23983046

    OTİZM
    Bir teoriye göre, OTOSTİKbozukluklar enerji eksikliğine ve yüksek düzeyde oksidatif strese dayanır. Massachusetts Üniversitesi ve diğer üniversitelerden bilim adamları, sülforafanın güçlü antioksidan etkilerinin otizm için de geçerli olup olmadığını araştırdı. Yaşları 13 ile 27 arasında değişen 44 otistik erkeğe yüksek konsantrasyonlarda sülforafan verdiler. Çalışma süresinin sonunda, plasebo grubuna kıyasla önemli bir gelişme gösterdiler. (Web'deki makale: Görünürde otizm için bir tedavi mi? Araştırmacılar brokoli üzerine bahse giriyor , çalışma: Otizm spektrum bozukluğunun (ASD) sülforafan tedavisi )

    Bağırsak koruma ve CROHN hastalığı
    Mayıs ayında Frankfurt Üniversitesi'nde hücre kültürleri üzerine yapılan bir araştırma, sülforafanın bağırsak mukozasının kronik iltihaplanmasına karşı koyarak bağırsakları koruduğunu gösteriyor. Sülforafanın, HBD-2 polipeptidini oluşturmak için bağırsak hücrelerini uyardığı gösterilmiştir. Bu, tüm gastrointestinal sistemin duvarlarında bulunur ve antimikrobiyal özelliklere sahiptir. HBD-2 azalırsa, bağırsak iltihabı Crohn hastalığı ile bir bağlantı vardır. Diğer deneyler, sülforafanın bağırsaktaki birçok anti-inflamatuar süreç üzerinde olumlu bir etkiye sahip olduğunu gösterdi. (Pharmazeutische Zeitung'daki makale: Darmschutz mit Broccoli , Çalışma: Diyetteki histon deasetilaz inhibitörü sülforafan, bağırsak epitel hücrelerinde insan ß-defensin-2'yi indükler )

    CANDİDA ve diğer patojenler:
    Sülforafanın, geleneksel antibiyotiklere direnç geliştirebilenler de dahil olmak üzere daha geniş bir patojen yelpazesine karşı ne kadar etkili olduğunu bulmayı amaçlayan bir çalışma. 28 farklı bakteri ve mantar patojeni incelenmiştir. Sonuç olarak, mikrobiyal türlerin 23'ü inhibe edilirken, beşinin dirençli olduğu kanıtlandı. İkincisi ayrıca Candida albicans'ı da içeriyordu. Bununla birlikte, sonuç, sülforafanın hem kanserli hem de kanserli olmayan hastalarda belirli enfeksiyon türlerini önlemede yardımcı olabileceğini göstermektedir.
    (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/18484523

    ÜLSERATİF KOLİT ve Sızdıran Bağırsak Sendromu (Leaky Gut Sendromunu):
    Bir araştırma, brokolinin bağırsakları, etkilenenlerin sızdıran bağırsak sendromu (=delikli bağırsaklar) veya kolit (=bağırsak iltihabı) nedeniyle sindirim sorunlarıyla daha iyi başa çıkacak şekilde etkileyebileceğini göstermiştir. Bağırsak bariyer fonksiyonunun iyi olması için yeşil sebzelerin kullanılması tavsiye edilir. Bu, örneğin Leaky Gut Sendromunuönlemek için kullanılabilir. Bu da ülseratif kolit gibi kronik inflamasyonun nedeni olabilir. (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/29242716

    DİYABET TİP2
    Sülforafanın karaciğerde glikoz oluşumunu antidiyabetik metforminden farklı bir şekilde engellediği ve bu nedenle tip 2 diyabet tedavisinde onunla kombinasyon halinde kullanılabileceği bulundu. Science Translational Medicine'de ( 2017; 9: eaah4477 ) yapılan bir klinik çalışmada , brokoli filizi özütü, metforminin tek başına kan şekerini normalleştiremediği (muhtemelen) aşırı kilolu tip 2 diyabetlilerde kan şekerini düşürmüştür. (Makale: Tip 2 diyabet: çalışmada araştırılan brokoli etkisi )

    OBEZİTE için sülforafanSülforafan ile kilo vermek? Karaciğerdeki glikoz metabolizması üzerindeki etkisi, tip 2 diyabet tedavisi konseptinde olası bir kullanımla bağlantılı olarak halihazırda araştırılmıştır . Obezitenin iyileştirilmesi için yararlı bir potansiyel bu nedenle açıktır. Diğer şeylerin yanı sıra, farelerde yağ dokusundaki değişiklikler yoluyla yağlanma ( obezite ) ve insülin direnci üzerindeki etkilere ilişkin bir çalışmanın sonuçları yayınlandı (kaynak: brokoli filizlerinde bir fitokimyasal olan Sulforaphane, obeziteyi iyileştirir ). Daha fazla araştırma beklemededir ( sülforafanın obeziteyle mücadeledeki potansiyel etkileri dahil ).

    BAĞIŞIKLIK SİSTEMİ
    Kaliforniya Üniversitesi'nde sülforafanın serbest radikallerle savaşmada potansiyel olarak etkili olduğunu bulan bir araştırma yapıldı. Antioksidan genleri ve enzimleri aktive eder, bu da yüksek oranda reaktif moleküllerin zararlı etkilerini inhibe edebilir. Çalışmaya göre, bu yetenek, serbest radikallerin bağışıklık sistemi üzerindeki olumsuz etkilerinin çoğunu tersine çevirmede ve onu güçlendirmede önemli bir rol oynayabilir. Bunu akılda tutarak, sülforafanın güçlü bir bağışıklık sistemini desteklediği varsayılabilir. (Makale: Çalışma, brokolinin yaşlanan bağışıklık sistemini güçlendirmeye yardımcı olabileceğini buluyor )

    SOĞUK ALĞINLIĞI
    Hindistan'da yapılan bir araştırma, sülforafanın doğal öldürücü hücrelerin aktivitesini önemli ölçüde artırdığını gösterdi. Ayrıca sülforafan, antikor oluşumunda spesifik bağışıklık sistemini destekler. Ve güçlü bir bağışıklık sisteminin soğuk algınlığı ve benzeri hastalıklara karşı da koruduğu bilinen bir gerçektir. (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/16997793 Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/16997793

    ANTİAGİNG; yaşlanma süreçleri
    Yukarıdaki çalışmanın lideri Dr. Andre Nel ayrıca şunları söyledi: "Bu süreçlere ilişkin içgörü, yaşlanmanın etkilerini hafifletebileceğimiz yollara işaret ediyor." Dolayısıyla, yaşlanmaya karşı sülforafan kullanımı da mümkün olabilir. (Makale: Çalışma, brokolinin yaşlanan bağışıklık sistemini güçlendirmeye yardımcı olabileceğini buluyor )

    SAÇ DÖKÜLMESİNE ve saç büyümesine karşı etkisi
    Androjenik alopesi, saç yoğunluğunda genetik olarak belirlenmiş, ilerleyici bir azalma ile karakterize edilen en yaygın saç dökülmesi şeklidir. Bu saç dökülmesi hem erkeklerde hem de kadınlarda olabilir ve kronikleşirse yaşla birlikte artar. Bunun nedeni saç köklerinin steroid hormonu dihidrotestosterona (DHT) karşı duyarlılığıdır. Saç kökleri DHT tarafından zarar görür ve zayıflar ve büyüme fazı kısalır. Kalıtsal saç dökülmesine karşı kullanılan birçok ilacın aktif yaklaşımı bu nedenle DHT'nin etkilerini azaltmaya yöneliktir.

    Farelerle yapılan çalışmalarda, sülforafan tedavisinin karaciğerdeki 3α-hidroksisteroid dehidrojenaz miktarını arttırdığı , DHT üzerinde bozucu etkiye sahip bir enzimin, DHT'nin kanda daha hızlı parçalanmasına ve dolayısıyla DHT'nin baskılanmasını bloke ettiği bulundu. saç uzaması. Testte, altı hafta boyunca 10 mg/kg vücut ağırlığı) sülforafan uygulandı ve saç rejenerasyonu ve plazma testosteron ve DHT seviyeleri ile çeşitli hormonlar sürekli olarak incelendi. Sonuç olarak, androjenik alopesi üzerinde olumlu bir etki olduğu varsayılır (kaynak: Sulforaphane, dihidrotestosteronun bozunmasını hızlandırarak murin tüylerinin büyümesini destekler ).

    SÜLFORAFANIN Antioksidan Etkileri
    Sülforafanın doğrudan bir antioksidan etkisi yoktur. Yine de, antioksidan hücresel aktiviteyi dolaylı olarak arttırdığına dair yeterli kanıt var. Hatta sülforafanın serbest radikallere karşı örneğin C ve E vitaminlerinden çok daha stratejik olduğu söylenebilir. Çünkü bunlar pratik olarak serbest radikallere karşı mücadelede kendilerini feda ederken, sülforafan arka planda etki eder. Karaciğerde vücudun kendi enzimlerini aktive eder, bu daha sonra serbest radikalleri nötralize eder ve böylece daha fazla hasarı önler. Sülforafanın dolaylı etkisi, vücut tarafından birkaç gün kullanılabilir kalması anlamına gelir. Serbest radikaller çok reaktif oksijen molekülleridir. Aşırıya kaçabilirler, yorgunluk ve azalan performans, depresyon, uyku ve sindirim bozuklukları ve bağışıklık yetersizliğinden kronik sırt ağrısı veya baş ağrılarına ve hayatı tehdit eden kardiyovasküler hastalıklara kadar çok sayıda şikayet ve hastalığa neden olur. (Öğeler:Malign tümörlerin önlenmesi ve tedavisinde turpgiller familyasından glukozinolatlar (pdf); Çalışma: Kanser önleyici izotiyosiyanatlar: insan maruziyetinin ölçümü ve etki mekanizması )

    SEDEF hastalığı sözde otoimmün hastalıklardan biridir . Bu kronik inflamatuar hastalıklar, antioksidanlarla etkili bir şekilde mücadele edilebilir. Sulforaphane yüksek bir antioksidan etkiye sahiptir ve bu nedenle oksidatif stresi azaltabilir ve ayrıca sedef hastalığında yardımcı olabilir. Bir çalışma bunu doğrulamaktadır. Burada, sülforafan içeren izotiyosiyanatlar (ITC'ler) araştırıldı. Çalışmadan elde edilen sonuç, ITC'lerin sedef hastalığı ve inflamatuar cilt hastalıklarında terapötik olarak kullanılma potansiyeline sahip olduğunu göstermektedir (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/22453842 )

    GASTRİT, ÜLSER; Heliobacter pylori'de sülforafan
    Bu bakteri türü mide astarına yerleşir ve çok çeşitli mide sorunlarına yol açabilir ve mide kanseri riskini artırabilir. Baltimore'daki Johns Hopkins Üniversitesi'nden bilim adamları, sülforafanın heliobakter üzerindeki etkilerini incelediler. Denekler sekiz hafta boyunca günlük 70 gram taze brokoli filizi yediler. Mikrop yükü önemli ölçüde düştü. Araştırmacılar, gelecekte mide kanserini önlemenin de bir yolunun bulunduğunu umuyorlar. Fareler üzerinde çalışırken, sülforafanın mide mukozasını oksidatif hasar ve iltihaplanmadan koruyan iki enzimin aktivitesini dört katına çıkardığını da buldular.
    (Ders çalışma:Sülforafan hücre dışı, hücre içi ve antibiyotiğe dirençli Helicobacter pylori suşlarını inhibe eder ve benzo[a]piren kaynaklı mide tümörlerini önler ) Diğer çalışmalar ayrıca sülforafanın Helicobacter pylori'ye karşı antiseptik bir etkiye sahip olduğunu göstermiştir - hatta bir bakteriye karşı zaten aktif olan suşlara karşı. çok çeşitli antibiyotiklere karşı direnç geliştirmiştir. (Kaynak: wikipedia.de , ileri çalışmalar: Brokoli (Brassica oleracea L.) filizlerinde bulunan sülforafan ve ilgili bileşiklerin analizi ve anti-Helicobacter aktivitesi, Farelere implante edilen insan mide ksenograftlarında Helicobacter pylori'nin yok edilmesinde sülforafanın etkinliği )

    Helicobacter pylori bakterisi genellikle gastrit tetikleyicisidir . Kanıtlanmış Helicobacter pylori enfeksiyonunun neden olduğu gastritten muzdarip 10 kişiyle yapılan küçük bir çalışmada, brokoli filizi yedikten sonra bir iyileşme oldu (kaynak: https://www.ncbi.nlm.nih.gov/pubmed/15387326. Ancak karşılaştırma grubu yoktu ve çalışma diğer noktalarda yeterince anlamlı değildi. Bilim adamlarına göre, optimal brokoli filizi dozunu belirlemek ve ilave ilaç uygulamasının etkilerini artırıp artıramayacağını bulmak için daha fazla araştırmaya ihtiyaç var. Bir başka çalışmada da sonuç olarak brokoli filizi yardımıyla mide bakterilerinin kolonizasyonunun azalması ve sonraki hastalık üzerinde olumlu bir etki formüle edilmiştir. Ek olarak, 2 aylık bir süre boyunca günlük brokoli filizi alımı, mide mukozasını Helicobacter pylori'nin neden olduğu oksidatif stresten daha iyi korumuş gibi görünmektedir. (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/19349290

    Yengeç Burcu
    Şu anda kanserle bağlantılı olarak sülforafanın olumlu etkilerini araştıran çeşitli çalışmalar var. Sülforafanın kanser önleyici etkisinin, turpgillerden sebzelerin tüketiminin artması ve akciğer kanseri, meme kanseri, prostat kanseri veya kolon kanseri gibi çeşitli kanser türlerinin gelişme riskinin azalmasıyla ilişkili olduğu gösterilmiştir. (Makale: Habis tümörlerin önlenmesi ve tedavisinde turpgiller familyasından glukozinolatlar(pdf)) Genel olarak konuşursak, sülforafan hücrenin bölünme sürecine müdahale eder ve süreçteki bazı maddeleri yok eder. Bu, hücre çekirdeğinin bölünmesini engeller ve kanser hücresi ölmeye mahkumdur. Sulforaphane ayrıca kanser kök hücrelerini (tekrar) kemoterapiye tepki verecek şekilde değiştirebilir (kaynak: wikipedia.de )

    Bazı örnekler:
    • PANKREAS KARSİNOMU durumunda, özellikle çok sayıda agresif tümör kök hücresi oluşur. Bunlar kendilerini diğer tümörlerde etkili olan kanser ilaçlarına karşı bile korurlar. Bunu yapmak için, sülforafanın sırayla etkisiz hale getirebileceği ve söz konusu kanser hücrelerini tedaviye daha duyarlı hale getirebileceği özel bir mekanizma kullanırlar. Ek olarak, pankreas kanseri olan 1300'den fazla hastayla yapılan bir Kanada araştırması, çok fazla brokoli ve karnabahar yemenin tümör metastazlarına karşı koruma sağlayabileceğini gösterdi. (Makale: Brokolideki Sülforafan Pankreas Tümörlerinde Dirençli Tümör Kök Hücrelerini Hassas Hale Getiriyor )
    • New Jersey'deki Rutgers Üniversitesi'ndeki bilim adamları, sülforafanın genetik yatkınlığı olan kişilerde kolon kanserinin başlamasını önleyebileceğini bir çalışma yürüttükten sonra söylediler. Vücudun gerekli koruyucu mekanizmalarını harekete geçirebilir. (İngilizce makale: Kolorektal Kanser )
    • SÜLFORAFANIN etkisi MEME KANSERİNDE de incelenmiştir. Michigan Üniversitesi'ndeki araştırmacılar, sülforafanın meme kanseri kök hücrelerinin büyümesini engellediğini buldu. (Çalışma: Brokoli/brokoli filizlerinin besinsel bir bileşeni olan sülforafan, meme kanseri kök hücrelerini engeller )
    • GDANKS Üniversitesi'nden bilim adamları, çok benzer sonuçlara, yani sülforafanın meme kanseri hücrelerinin canlılığını engellediği sonucuna vardılar. (Çalışma: Sülforafan, fenotipik olarak farklı meme kanseri hücrelerinin büyümesini engeller )
    • 2012'de ÇOK ÜNİVERSİTELİ bir araştırma (1. Jemal A, Siegel R, Ward E, Hao Y, Xu J, et al. (2008) Kanser istatistikleri, 2008 . CA Kanser), sülforafanın lösemi kanser hücrelerinin yok olmasına da neden olabileceğini gösterdi. (Çalışma: SÜLFORAFAN AKUT LENFOBLASTİK LÖSEMİ Hücrelerinde Hücre Döngüsü Tutuklamasına ve Apoptozu İndükler )
    • Heidelberg Üniversitesi'nde pankreas kanseri ve ilaç sorafenib (Bayer AG) ile bağlantılı olarak sülforafan ile bir çalışma yapılmıştır. Pankreas kanserinin tedaviye çok dirençli olduğu ve kök hücrelerle savaşmanın zor olduğu daha önce gösterilmişti. Güçlü, hoş olmayan yan etkilere ek olarak, sorafenib kansere karşı da olumlu etkiler gösterdi. Ne yazık ki, bunlar sadece kısa bir süre sürdü. Yeni kanser kök hücreleri hızla oluştu ve o andan itibaren artık sorafenib tedavisine yanıt vermedi. Bununla birlikte, ilaç brokoli ile birleştirilirse, ek yan etkiler olmadan etkili kalır. Sülforafanın sağlıklı vücut hücrelerini sorafenibin yan etkilerinden koruyabildiği bile gösterilmiştir. (Ders çalışma:Sorafenib ve sülforafanın sinerjistik aktivitesi, pankreas kanseri kök hücre özelliklerini ortadan kaldırır )
    • Pankreas kanseri: Ayrıca, 2013'ün sonunda Heidelberg Üniversitesi, ilerlemiş pankreas kanseri için kemoterapiye ek tedavi olarak brokoli filizi kapsülleri ile bir çalışma başlattı. Amaç, ilave brokoli filizi uygulamasının tümör belirteçleri ve tümör büyümesi, yaşam kalitesi ve hastanın hayatta kalması üzerindeki etkisini incelemektir. Çeşitli etkiler nedeniyle, bu çalışma için hala bir sonuç yok. Şu anda sponsor aranıyor. Kaynak ve daha fazla bilgi: https://www.klinikum.uni-heidelberg.de/patienstudien-mit-Brokkolisprossen.138800.0.html
    • Karnabahar ve brokoli PROSTAT KANSERİNE karşı ve bağırsak florası için: Heidelberg Üniversitesi prostat kanserli hastalarda yapılan bir beslenme çalışmasına atıfta bulunuyor. Haftada 3 ila 5 porsiyon brokoli ve karnabahar yemenin bazı hastalarda tümörleri %50 oranında azalttığı bulundu. Diğer çalışmalar, lahananın kanser önleyici bir etkiye sahip olduğunu göstermiştir. Çok sayıda bilimsel araştırmaya göre, bu esas olarak sülforafan içeriği ve akrabalarından kaynaklanmaktadır. Bu maddeler, tümör büyümesini engelleyen enfeksiyon ve iltihaplanma ile etkili bir şekilde savaşır. Son verilere göre brokoli ve karnabahar bağırsak florasını da güçlendiriyor. Bu da sağlıklı bir bağışıklık sistemi ve tümör hücrelerine karşı güçlü vücut savunması açısından büyük önem taşımaktadır. (Kaynak:https://www.klinikum.uni-heidelberg.de/patienstudien-mit-Brokkolisprossen.138800.0.html
    • MESANE KANSERİ: New York'taki Rosswell Park Kanser Enstitüsünde yapılan bir pilot çalışma, brokoli filizinden elde edilen sülforafanın mesane kanserinin büyümesini nasıl etkilediğini araştırıyor. Karsinom çıkarıldıktan sonra, deneklere iki hafta boyunca günde 88 mg sülforafan verilir. Şu anda bunun için herhangi bir çalışma sonucu mevcut değil. Kaynak: https://clinicaltrials.gov/ct2/show/NCT01108003
    • CİLT KANSERİnde sülforafan Brokoli filizlerinin cilt kanserini önlemedeki etkinliğini araştırmak için Pittsburgh Üniversitesi'nde şu anda bir pilot çalışma yürütülüyor . Bu amaçla, 17 denek , 28 gün içinde farklı konsantrasyonlarda brokoli filizi ekstraktından sülforafan kapsülleri aldı . Şu anda hiçbir çalışma sonucu mevcut değil (kaynak: https://clinicaltrials.gov/ct2/show/...1568996&rank=1 ). Bir cilt kanseri türünde, yani skuamöz hücreli karsinomda, sülforafan, kemoterapi ilacı sisplatinin etkinliğini iyileştirebildi. (Kaynak: https://www.ncbi.nlm.nih.gov/pubmed/28796401 )
    • Sülforafan ve Kas Yapısı; Bir İtalyan çalışmasında, bilim adamları, domuzların kaslarından elde edilen sözde uydu hücreleri ile deneyler yaptılar. Bunlar insanlarınkine benzer ve kas hücrelerine dönüşebilir. Uydu hücrelerine çeşitli dozlarda sülforafan eklendi. Bu, kas büyümesini engelleyen miyostatin üretimini azaltırken hücre canlılığını arttırır. Araştırmacılar hala bu etkinin neden ortaya çıktığını bilmiyorlar. Aynı zamanda, örneğin iskelet kası hastalıklarının tedavisi ile ilgili olarak, sülforafan konusunda yüksek beklentileri vardır. (Çalışma: https://www.ncbi.nlm.nih.gov/pubmed/23092945 ).
    • Sülforafan ile ilgili ve sülforafanla ilgili ileri çalışmalar / araştırma çalışmaları Araştırma çalışmalarını, özellikle sülforafanla ilgili, durumu çoğunlukla henüz tamamlanmamış veya sonuçları belirsiz olan araştırmaları ve incelemeleri burada topluyorum. Bazı durumlarda, çalışmalar henüz başlamamıştır. Ayrıntılar orijinal kaynağa bağlantıda bulunabilir. Burayı düzenli olarak güncelliyorum ve ipuçları almaktan her zaman mutlu oluyorum.
    • Şizofreni tedavisinde (Hua Jin, Kaliforniya Üniversitesi, San Diego) ve ayrıca semptomların giderilmesinde sülforafan
      Kaynaklar, çalışma durumu: https://clinicaltrials.gov/ct2/show/NCT02880462
      https://clinicaltrials.gov/ct2/show/NCT02810964
      https://www. ncbi.nlm.nih.gov/pubmed/25912539?dopt=Özet
    • Özellikle UV radyasyon kaynakları ile ilgili olarak cilt yaşlanması ile bağlantılı olarak sülforafan , çalışma durumu: https://clinicaltrials.gov/ct2/show/NCT03730649 https://clinicaltrials.gov/ct2/show/NCT03126539
    • Bir antagonist olarak sülforafanın insanlarda ilaç etkileşimleri
      üzerindeki etkileri Kaynak, çalışma durumu: https://clinicaltrials.gov/ct2/show/NCT00621309
    • Kistik fibroz ve sülforafan
      Kaynak, çalışma durumu, sonuçlar: https://clinicaltrials.gov/ct2/show/NCT01315665
    • OTİSTİK, Otizm spektrum bozuklukları OSB'li çocuklarda GI (Gastointersistial) işlev bozukluğunun altta yatan patolojisini değerlendirmeye odaklanan çalışmalar, bağırsak protein kaybını düşündüren düşük a-1-antitripsin konsantrasyonları ( Walker-Smith ve Andrews 1972 ), bir laktuloz:mannitol testi ile ölçüldüğü üzere bağırsak geçirgenliğinde artış ( D) göstermiştir.
    Sülforafan hakkında sık sorulan sorular
    sülforafan nedir?
    Sülforafan içeren brokoli filizi ve brokoli
    Sülforafan maddesi bir izotiyosiyanattır (ITC) veya daha basit olarak bir hardal yağıdır. Bu ikincil bitki maddesi, turpgiller olarak adlandırılan çeşitli sebze türlerinin tipik olarak keskin tadından sorumludur. Çoğu durumda, hardal yağları sebzelerde yalnızca aktif olmayan bir öncü içinde bulunur. Bu aynı zamanda sülforafan için de geçerlidir. Oluşabilmesi için bitki hücrelerinin enzimatik olarak "yeniden inşa edilmesi" gerekir. Sülforafan yatakları hakkında daha fazla bilgi . Sulforaphane şimdi çok sayıda çalışmada araştırılmıştır. Sağlığa etkilerini birçok hastalık üzerinde göstermiştir. Örneğin hardal yağı, antioksidan, antienflamatuar, detoksifiye edici, bağışıklık güçlendirici, antimikrobiyal ve kanser önleyici etkilere sahiptir. Hangi şikayetler ve sorunlar hakkında daha fazla bilgi edinin sülforafanyardımcı olabilir.

    Sülforafan köpekler için de faydalı mı?
    Sülforafan'ın köpeklerde kullanımına dair bir çalışma yok, ancak olumlu deneyimler var. Köpeklerin bağışıklık sistemini güçlendirmek ve kanser tedavisini desteklemek için sülforafan içeren ek yemler sunulmaktadır. Fareler ve insanlarla yapılan çalışmalarda keşfedilen diğer olumlu etkiler, dört ayaklı arkadaşlar için de geçerli olabilir. Şüpheniz varsa, bunun hakkında - ayrıca aşağıdaki öneriler hakkında veterinerinizle konuşmanız en iyisidir: Köpeğiniz artrit, iltihaplanma, cilt problemleri, kanser, romatizma veya benzerlerinden muzdaripse, onu sülforafan içeren yiyeceklerle beslemek mantıklı olabilir. . Sülforafan içeren hazır gıdalar veya diyet takviyeleri kullanabilirsiniz. Ya da hafif buharda pişirilip püre haline getirilmiş sebzeleri dört ayaklı arkadaşınızın yemeğiyle karıştırabilirsiniz. Küçük dozlarla başlamalı ve hayvanınızın her şeyi ne kadar iyi tolere ettiğini görmelisiniz. Köpekte şişkinliğe neden olma olasılıkları daha yüksek olduğu için çiğ sebzeler tavsiye edilmez.

    Atıma sülforafan verebilir miyim?
    Sülforafanın anti-inflamatuar, antibakteriyel ve antioksidan etkilerinin, özellikle stres nedeniyle hassas bir mideden muzdarip olan atlarda da yararlı olduğu söylenir. Hayvanların yemine ekleyebileceğiniz karşılık gelen granüller vardır. Bunlar ayrıca sindirim sistemindeki ve gastrointestinal ortamdaki asit-baz dengesini de düzenlemelidir. İnsanlardakine benzer maddenin atlardaki diğer rahatsızlıklara da etki edip etmediği bilinmiyor. Her durumda, atın sülforafanla iyi geçindiğinden emin olmalısınız, çünkü hayvanlar da farklı aktif maddelere ayrı ayrı tepki verir. Bunu tedavi eden veterinerle görüşmenizi tavsiye ederim.

    Sülforafan organik midir?
    Sülforafan maddesi hardal yağıdır. "Organik" teriminin tanımı ile ilgili olarak, AB'nin yasal hükümleri ile ilgilidir. Açıkça söylemek gerekirse: Organik olarak işaretlenmiş bir brokoliyi işlerseniz, "organik sülforafan" da elde etmiş olursunuz. Organik sertifikalı diyet takviyeleri de vardır.
    Burhan Sarıkaya
    SÜLFORAFAN BROKOLİ kullanıyorum mide rahatsizligima HELİKOBAKTERİ problemime çok iyi geldi.
    KAYNAK

    Kadir Özer
    Sülforan kullanıyorum performans artışı sağladı, hocam bunun içine viagra mı kattınız. Harika bir ürün.
    KAYNAK

    Şadiye Çetinkaya
    SÜLFORAFAN kullandığımda ne UYKU SORUNU ne de YORGUNLUK hissetmiyorum. teşekkürler hocam.
    KAYNAK

    Elif Altın
    SÜLFORAFAN kullandım KARACİĞERLERİMİ TEMİZLEDİ nefes almayı kolaylaştırdı dünya varmış.
    KAYNAK

    Kadir Özer
    SÜLFORAFAN kullanıyorum, kendimi daha zinde hissediyorum. Ramazan ayı çok rahat geçiyor. Ürünlerinizin hepsi çok güzel teşekkürler
    KAYNAK

    Sultan Durmuş
    Merhaba hocam SÜLFORAFAN 2 haftadır kullanıyorum Hormonları dengeliyor ve vücuda Enerji veriyor herkese tavsiye ediyorum teşekkürler
    KAYNAK

    Kerim Abdullah
    Ağır Mide Sorunlarım vardı yemekleri Sindirmekte zorlanıyordum. SÜLFORAFAN kullanmaya başladığımdan beri SİNDİRİM sorunlarım kalmadı. Herşeyi tüketebiliyorum, MİDE ASİDİM YÜKSELDİ ve HAZIMSIZLIK sorunum kalmadı. Allah razı olsun.
    KAYNAK
    Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 21 April 2022, 08:34 ) değiştirilmiştir.

  • #2
    BROKOLİ Filizindeki etken maddeler (Sulforafan) Brokoliden 1000 kat daha fazladır


    Nörodejeneratif Hastalıklarda Sulforafanın Etkinliği
    Giovanni Schepici , Placido Bramanti ve Emanuela Mazzon *
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
    Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .

    Git: Soyut
    Sulforaphane (SFN), izotiyosiyanat ailesine ait bir fito-bileşiktir. Tohumlarda ve olgun bitkilerde de bulunmasına rağmen, SFN esas olarak lahana, brokoli, karnabahar ve Brüksel lahanası dahil olmak üzere birçok turpgil sebzenin filizlerinde bulunur. SFN, glukorafaninin, bu izotiyosiyanatın oluşumuna yol açan enzim mirosinaz yoluyla dönüştürülmesiyle üretilir. SFN özellikle antioksidan, antiinflamatuar ve antiapoptotik özellikleri ile karakterize edilir ve bu nedenle araştırmacıların ilgisini çekmiştir. Bu derlemenin amacı, Alzheimer hastalığı (AH), Parkinson hastalığı (PD) ve multipl skleroz (MS) dahil olmak üzere nörodejeneratif hastalıkların tedavisinde SFN'nin etkinliğini bildiren Pubmed'de mevcut olan deneysel çalışmaları özetlemektir. Bu nedenle faydalı etkileri sayesinde,

    Anahtar Kelimeler: sülforafan, nöroprotektif etkiler, Alzheimer hastalığı, Parkinson hastalığı, multipl skleroz
    Git: 1. Giriş
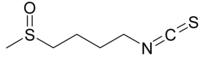
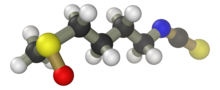
    [1-izotiyosiyanato-4-(metilsülfinil)bütan] olarak bilinen sülforafan (SFN), öncüsü glukofanin, esas olarak brokoli, karnabahar, lahana ve Brüksel lahanası gibi turpgil sebzelerde bulunan alifatik bir izotiyosiyanattır [ 1 ]. SFN, β-D-tiyoglükoz, bir oksim sülfonat ve metionin, triptofan, fenilalanin veya diğer amino asitlerden oluşan değişken bir yan zincirden oluşan temel bir yapı ile karakterize edilen, biyolojik olarak aktif olmayan bileşikler olan glukozinolatların bozunmasıyla üretilir. amino asitler [ 2 ]. Ayrıca, yan zincir yapısının, kimyasal, fiziksel tespit alifatik, aromatik veya heterosiklik gruplar ve izotiyosiyanatları biyolojik özelliklerini [içerebilir 3]. SFN'nin biyosentezi, bitkilerde bulunan ve aktif olmayan epitiobelirleyici (ESP) proteini ile birlikte SFN oluşumuna yol açan mirosinaz enzimini içeren bir hidroliz reaksiyonu yoluyla gerçekleşir. Tersine, ESP'nin mirosinaz ile birlikte aktif formu, SFN nitril sentezine yol açar [ 4 , 5 ].

    Moleküler yapısı ve lipofilik yapısı sayesinde SFN yüksek biyoyararlanım gösterir. Gerçekten de, sıçanlarda SFN'nin plazma zirvesine 4 saatte ulaştığı ve ortalama yarılanma ömrü yaklaşık 2,2 saat olduğu gösterilmiştir [ 6 , 7 ]. Bunun yerine, memelilerde, SFN, GSH'yi içeren glutatyon (GSH) S-transferaz tarafından katalize edilen bir konjugasyon reaksiyonu yoluyla hızla metabolize edilir ve SFN'nin sürekli absorpsiyonu yoluyla bir konsantrasyon gradyanının oluşumuna yol açar, bu da onun ihracatını dengeler [ 4 , 8 ]. Ayrıca, SFN konsantrasyon gradyanı, membran taşınmasında önemli olan P-glikoprotein ve Çoklu İlaç Direnci İlişkili Protein 1'i içeriyor gibi görünmektedir [ 9 ].

    SFN, antioksidan, anti-inflamatuar ve antiapoptotik etkileri olan bir fito-bileşiktir. Oksidatif stres, inflamasyon ve mitokondriyal disfonksiyon nörodejeneratif hastalıklarda rol oynadığından, bilim camiasının buna olan ilgisi artmıştır. Bu nedenle, özelliklerine dayanarak, SFN, Alzheimer hastalığı (AH), Parkinson hastalığı (PD) ve multipl skleroz (MS) dahil olmak üzere ana nörodejeneratif hastalıklarda araştırıldı. İçindeŞekil 1PD, AD ve MS'de yer alan oksidatif stres ve inflamasyon yollarını şematize ediyoruz.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ijms-21-08637-g001.jpg
    Şekil 1
    Parkinson hastalığında (PD), Alzheimer hastalığında (AD) ve multipl sklerozda (MS) oksidatif stres ve inflamasyon yollarının şematik gösterimi. Şekil, Creative Commons Attribution 3.0 Unported License ( https://creativecommons.org/licenses/by/3.0/ ) altında lisanslanan Servier Medical Art'tan ( http://smart.servier.com/ adresinde mevcuttur ) görüntüler alınarak yapılmıştır. ). ROS, Reaktif oksijen türleri; HAYIR, Nitrik oksit; RNS, Reaktif nitrojen türleri; HO-1, Heme oksijenaz 1; NQO-1, Nikotinamid adenin dinükleotid fosfat kinon oksidoredüktaz 1; GSH, Glutatyon; MDA malondialdehit; p62; H 2 O 2,Hidrojen peroksit; TNF-a, Tümör nekroz faktörü-a; IL-6, İnterlökin-6; IL-1p, İnterlökin-1p; IFN-y, Interferon-y; ERK, Hücre dışı sinyalle ilgili kinaz; p38; JNK, c-Jun N-terminal kinazı; NF-KB, Nükleer faktör kappa-B; ASK1, Apoptoz sinyal düzenleyici kinaz 1; APP, Amiloid öncü proteini; Ap, Beta-amiloid; BACE, β-sekretaz.

    Çalışmamızın amacı, AD, PD ve MS dahil olmak üzere nörodejeneratif hastalıklarda SFN'nin etkinliğini göstermektir. Bu derlemeyi yazmak için, “sulforaphane” ve “Alzheimer hastalığı” (35 makale), “sulforaphane” ve “Parkinson hastalığı” (33 makale) ve “sulforaphane” ve “Multiple” anahtar kelimelerini kullanarak bir PubMed araması yaptık. skleroz” (13 makale). Nörodejeneratif hastalıkların yönetiminde SFN'nin etkilerini bildiren 2005-2020 yılları arasında yayınlanan makaleleri inceledik.

    Git: 2. SFN ve Moleküler Hedefi
    SFN, moleküler hedef nükleer faktör eritroid 2 ile ilgili faktör 2 (Nrf2) ile kükürt açısından zengin bir bileşiktir. Ayrıca, nöroinflamasyon, oksidatif stres, mitokondriyal disfonksiyon, eksitotoksisite ve nöronal hasar gibi nörodejeneratif hastalıklarda meydana gelen çeşitli patolojik olaylar Nrf2'yi içerebilir [ 8 ]. Gerçekten de, Nrf2 ekspresyonu, nikotinamid adenin dinükleotid fosfat kinon oksidoredüktaz 1 (NQO-1), heme oksijenaz 1 (HO-1), GSH S-transferaz gibi detoksifiye edici ve antioksidan etkiye sahip sitoprotektif enzimler aracılığıyla hareket eden SFN tarafından düzenlenebilir. ve tioredoksin redüktaz, böylece oksidatif strese karşı koyar [ 10 ]. Nrf2, insanlarda NFE2L2 tarafından kodlanan, başlık ve yaka yapısına sahip, temel bir transkripsiyon faktörü lösin fermuarlı (bZIP)' dir.gen. Ek olarak, Nrf2, redoks dengesi ve hücresel detoksifikasyon yanıtlarının ana düzenleyicisini temsil eder, ayrıca hücresel savunma mekanizmasını uyarır [ 11 ]. Nrf2 sinyal yolu, antioksidan tepki elemanlarını (ARE) ve Kelch benzeri ECH ile ilişkili protein 1'i (Keap1) içerir. Fizyolojik koşullarda, Keap1, ubikuitin-proteazom sistemi (UPS) yoluyla Nrf2'nin yaygınlaştırılmasını ve parçalanmasını kolaylaştırmak için sistein kalıntıları sayesinde bir sensör redoks görevi gören sitoplazmada Nrf2'yi sekestre eder [ 12 , 13 ]. Daha sonra, Nrf2, Keap1'in sistein kalıntılarının oksidasyonunun meydana geldiği çekirdeğe yer değiştirir ve ardından bunun stabilizasyonu [ 14 , 15 , 16]]. Çekirdekte, Nrf2, muskuloaponeurotik fibrosarkom onkogen homologu (Maf) ile etkileşime girerek, sitoprotektif genlerin transkripsiyonel düzenlenmesinde anahtar rol oynayan ARE'yi aktive eder ve böylece bir nöroprotektif etki gösterir [ 17 ]. Bunun yerine, oksidatif stres ve reaktif oksijen türlerinin (ROS) veya reaktif nitrojen türlerinin (RNS) üretimi gibi stres koşullarında, Nrf2 ubiquitination ve degradasyon bloke edilir [ 13 ]. Bu nedenle, Keap1/Nrf2/ARE yolu aracılığıyla ve özellikle Nrf2 aktivasyonunu artırarak SFN, GSH peroksidaz 1, NQO-1, HO-1 ve gama-glutamilsistein sentetaz gibi moleküllerin yukarı regülasyonu yoluyla oksidatif strese karşı koymaya katkıda bulunabilir. GSH sentezini kontrol eden [ 18 , 19 ]].

    SFN'nin nöroprotektif rolü, Nrf2 yolu ile ilişkilidir; aslında, farelerde Nrf2 nakavtının (KO) veya SFN'nin gama-glutamilsistein sentetaz inhibitörleri ile kombine tedavisinin, SFN'nin nöroprotektif etkilerini ortadan kaldırdığı ve böylece SFN'nin Nrf2'yi hedeflediğini doğruladığı gösterilmiştir [ 20 , 21 , 22 ]. Ek olarak, SFN, mikroglial aktivasyonun aracılık ettiği nöronal hasarı azaltarak ve tümör nekroz faktörü-α (TNF-α), interlökin (IL) 6, IL-1β gibi inflamatuar mediatörlerin seviyelerini düzenleyerek anti-inflamatuar etkiler de gösterebilir. , indüklenebilir nitrik oksit sentetaz (iNOS) ve siklooksijenaz-2 (COX-2) [ 23 , 24]. Aynı şekilde, SFN, p38, hücre dışı sinyalle düzenlenen kinaz (ERK) 1/2 ve c-Jun N-terminal kinaz (JNK) dahil olmak üzere mitojenle aktive olan protein kinazların (MAPK) azalmasına yol açabilir. nekroz ve nöronal apoptozun azalmasına yol açan Reseptör Etkileşimli Serin/Treonin Kinaz 3, karışık soy kinaz alanı benzeri ve nükleer faktör kappa-B (NF-κB) gibi diğer inflamatuar mediatörler [ 25 ]. Aynı şekilde, SNF ayrıca sırasıyla inflamasyon ve apoptozda yer alan kaspaz-1 ve kaspaz-3'ün bölünmesini azaltabilir ve ayrıca IL-4 ve IL-10 gibi anti-inflamatuar sitokinlerin salınımını artırabilir. nöroinflamasyon ve hücre ölümünün azaltılması [ 26 ].

    Ayrıca, SFN, oksidatif stres oluşumu yoluyla, muhtemelen Nrf2-KO farelerinde gösterildiği gibi, bunun yerine otofaji ile ilgili daha az sayıda gen ifade eden Nrf2 yolunu içeren bir mekanizmaya göre nöronlarda otofajiyi teşvik edebilir [ 27 ]. Bununla birlikte, daha ileri bir çalışma Nrf2'nin otofajiye katılımını dışlamıştır [ 28 ]. Gerçekten de, SFN'nin, ERK'yi içeren bir mekanizma yoluyla, otofagosomal membranlara montajda yer alan bir protein olan hafif zincir 3-II (LC3-II) seviyelerinde artışı indüklediği gösterilmiştir [ 28 , 29 ].

    SFN ayrıca mitokondriyal fonksiyon üzerinde nöroprotektif bir etki gösterebilir; nöronlar enerji gereksinimlerini karşılamak için metabolik olarak aktif olduklarından, sağlıklı mitokondriye ihtiyaçları vardır [ 30 ]. Bu nedenle, Nrf2 yolu aracılığıyla SFN, mitokondriyal biyogenezi destekleyen genlerin aktivasyonunu teşvik edebilir, böylece mitokondriyal kompleks I, II ve IV'ü koruyarak adenosin trifosfat (ATP) üretimine yol açar, aksi takdirde nöronal hasarla azalır [ 31 ] .

    Ayrıca SFN, beyin kaynaklı nörotrofik faktör (BDNF) düzeylerini artırarak ve proliferasyon ve farklılaşmada rol oynayan β-katenin ve siklin D1 dahil olmak üzere Kanatsız tip (WNT) sinyal yolundaki anahtar proteinlerin ekspresyonunu yukarı doğru düzenleyerek nörojenezi de teşvik edebilir. nöronal [ 32 ].

    Git: 3. Alzheimer Hastalığının Deneysel Çalışmalarında Sülforafanın Etkileri
    AD, ilerleyici bilişsel eksikliklerle karakterize kronik nörodejeneratif bir hastalıktır [ 33 ]. Hastalık, plak oluşumuna ve hücre içi hiperfosforile tau proteini birikimine yol açan beta-amiloid (Aβ) peptitlerinin hücre dışı agregatlarını gösterir ve bu da nörofibriler yumakların oluşumuna yol açar [ 34 , 35 ]. Özellikle, amiloid öncü proteinin (APP) proteolitik bölünmesiyle üretilen peptidler Aβ 1-40 ve Ap 1-42 , oksidatif hasar, inflamasyon ve hücre içi kalsiyum artışı gibi hastalığın patolojik olaylarından sorumludur [ 36].]. Gerçekten de, oksidatif stresin artmasının ve endoplazmik retikulum proteinlerinin katlanmasının azalmasının yanı sıra otofajinin Aβ agregatlarını ve tau protein seviyelerini hızlandırdığı da gösterilmiştir [ 37 ]. Bu nedenle, nörodejenerasyonu bloke edebilen ve SFN gibi halihazırda bilinenleri desteklemek için hastalığa karşı koyabilen yeni stratejilere ihtiyaç vardır [ 38 ].

    3.1. Sülforafanın In Vivo AD Modellerinde Etkileri
    SFN'nin etkileri Hou ve ark. PS1V97L transgenik farelerde, dört ay boyunca SFN (5 mg/kg) ile intraperitoneal yoluyla tatbik edildi ve kontrol fareleri ile karşılaştırıldı. SFN'nin hayvanları davranış testleriyle değerlendirilen bilişsel eksikliklerden koruduğu gösterildi. Ayrıca, SFN'nin GSH ve malondialdehit (MDA) seviyeleri ile değerlendirilen Aβ agregasyonunu, tau hiperfosforilasyonunu ve ayrıca oksidatif stresi inhibe ettiği ve ayrıca TNF-α ve IL-1β seviyeleri ile değerlendirilen nöroinflamasyonu inhibe ettiği gösterilmiştir. İn vivo olarak elde edilen sonuçları doğrulamak için yazarlar, çalışmayı sıçanların birincil kortikal hücrelerinde de gerçekleştirdiler. Ayrıca, SFN'nin (0,1 μM) canlılığı iyileştirdiği ve 5 μM'lik farklı konsantrasyonlarda Ap oligomerleri inkübasyonunu takiben azalan kortikal nöronların dendritik uzunluğunu koruduğu, 10 uM ve 20 uM. Bu nedenle, çalışmanın sonuçları, SFN'nin AD'deki Aβ agregasyonunu önlemek için yararlı olabileceğini göstermektedir [39 ]. Ek olarak, yazarlar SFN'nin etkilerini Wang ve ark. Aβ (10 uL) intraserebroventriküler enjeksiyonları ile tedavi edilen Sprague-Dawley erkek sıçanlarında. Gerçekten de, yedi gün boyunca SFN (5 mg/kg) ile intraperitoneal yoluyla yapılan tedavinin, depresyon davranışını ve uzamsal öğrenmeyi iyileştirdiği gösterilmiştir. SFN muhtemelen hem serotonin metabolizmasında hem de serotonin taşıyıcısında yer alan triptofan hidroksilaz enziminin aktivitesini modüle ederek serotonerjik sistem aracılığıyla depresif davranışı korumuştur. Aynı şekilde, sıçan beyinlerinde, SFN'nin sırasıyla MDA, TNF-α ve IL-1β düzeylerinin azalmasıyla ve ayrıca GSH'nin artmasıyla ölçülen nöroinflamasyonu ve oksidatif stresi azalttığı gösterilmiştir [ 40].]. Zhang et al. ayrıca D-galaktozun (200 mg/kg) deri altı ve suda çözünmüş alüminyum klorür yoluyla kombine tedavisi ile indüklenen Alzheimer benzeri lezyonları olan C57BL/6 farelerinde ağızdan uygulanan SFN'nin (25 mg/kg) etkilerini de göstermiştir. 0.4 g/100 mL). Yazarlar, SFN tedavisinin Morris su labirenti ve açık alan testi ile değerlendirilen bilişsel ve lokomotor eksiklikleri iyileştirdiğini gösterdi. Ayrıca, SFN'nin oksidatif stresin artmasıyla azalan korteks ve hipokampusta Aβ plaklarının oluşumuna karşı koruduğu bildirilmiştir [ 41].]. Zhang et al. başka bir çalışmada, AD benzeri farelerde SFN'nin etkilerini gösterdi. Modeli uyarmak için sekiz haftalık Kunming fareleri, intragastrik yoluyla alüminyum (20 mg/kg) ve deri altına enjekte edilen D-galaktoz (120 mg/kg) ile tedavi edildi. Alüminyum ve galaktozun birlikte uygulanması, farelerin yaşlanmasını taklit ederek, öğrenme ve hafıza eksikliklerine yol açan nörotoksisite üretti. Ek olarak, nöronlarda alüminyumun APP aşırı ekspresyonunu indükleyebildiği ve sonuç olarak Ap üretimini arttırdığı bulundu. Ayrıca, 90 gün boyunca gavaj yoluyla günlük SFN (25 mg/kg) tedavisinin, hipokampus ve medial septumdaki alüminyum seviyelerinin azalmasıyla değerlendirilen kolinerjik nöron kaybını azalttığının yanı sıra bilişsel eksiklikleri de iyileştirdiği gösterildi. Yine de, spektrofotometrik analiz, kontrol grubuna kıyasla SFN ile tedavi edilen ve tedavi edilmeyen deney gruplarının korteksindeki asetilkolin ve asetilkolinesteraz aktivitesi seviyeleri arasında önemli farklılıklar göstermedi. Sonuç olarak, bu sonuçların nedenleri belirsizliğini koruyor ve bu nedenle daha fazla çalışmaya ihtiyaç var.42 ].

    Ayrıca Kim ve ark. AD farelerinde SFN'nin etkilerini bildirdi. Modeli indüklemek için, ICR farelerine akut olarak tek bir intraserebroventriküler Ap (5 uL) enjeksiyonu uygulandı. Altı gün boyunca SFN (30 mg/kg) ile intraperitoneal tedavinin bilişsel ve hafıza eksikliklerini iyileştirdiği gösterildi. Bununla birlikte, SFN, kümelenmiş Aβ oluşumunu engellemedi ve bu izotiyosiyanat ile tedavi, muhtemelen proteasomal aktivasyonu içeren bir mekanizma yoluyla oksidatif stresi azalttı. Bu nedenle SFN, AD'deki oksidatif strese karşı koymak için bir aday olabilir [ 43 ]. Oksidatif stres, Nrf2/ARE yolunu içeren bir mekanizmadır. Gerçekten de, AD'de Nrf2 ekspresyonunda bir azalma gözlendi [ 44]. Ek olarak, Nrf2 eksikliği, oksidatif stresin yanı sıra otofajik disfonksiyon ve tau fosforilasyonunda bir artışa yol açar [ 45 , 46 ]. Tersine, Nrf2 yukarı regülasyonu, oksidatif strese karşı nöro-korumayı destekler [ 44 , 47 ]. Nrf2, ARE bölgesine bağlanarak, hedef genlerin ekspresyonunu modüle ederek transkripsiyonel aktivatör rolünü oynar. Gerçekten de, Nrf2/ARE , Ap agregasyonunda ve dolayısıyla AD'de yer alan β-sekretaz 1'in ( BACE-1 ) ekspresyonunu düzenler [ 48]]. Ayrıca, yakın tarihli bir çalışma, doza bağımlı bir mekanizmaya göre SFN'nin, kontroller gibi kullanılan kuersetin ve resveratrol ile karşılaştırıldığında BACE-1'i ve dolayısıyla Ap agregasyonunu daha güçlü bir şekilde inhibe edebildiğini göstermiştir [ 49 ].

    Lee et al. ayrıca SFN'nin (10 veya 50 mg kg- 1) transgenik 3 x Tg-AD farelerinde oral gavaj yoluyla uygulandı. SFN tedavisi, öğrenme ve hafıza açıklarını iyileştirdi. Ayrıca, müteakip immünohistokimyasal analiz, SFN'nin hipokampustaki Aβ ve tau seviyelerinin yanı sıra korteksteki Ap seviyelerini önemli ölçüde azalttığını gösterdi. Benzer şekilde, SFN'nin, beyinde yüksek oranda eksprese edilen ve ubiquitination ve degradasyonda yer alan bir protein olan HSP 70 etkileşimli proteinin (CHIP) C-terminali olan ısı şok proteininin (HSP) yardımcı şaperon seviyelerini arttırdığı da bildirildi. Aβ, tau ve BACE-1. Bu sonuçları doğrulamak için deney, 3 x Tg-AD'den türetilen CHIP eksikliği olan nöronlarda da yapıldı. Gerçekten de, SFN ile tedavi, aynı zamanda Aβ ve tau seviyelerini azaltan CHIP seviyesini arttırdı, böylece bunların kümelenmesini önledi ve in vivo olarak elde edilen sonuçları doğruladı. Öyleyse,50 ].

    SFN'nin antioksidan ve antienflamatuar etkileri, bilişsel eksikliklere ve AD'ye katkıda bulunabilecek tip 2 diabetes mellitus ile ilişkili oksidatif streste de rapor edilmiştir. Gerçekten de, diyabetik hastaların ölüm sonrası beyinlerinde Ap plakları ve nörofibriler yumakların bulunduğu da gösterilmiştir [ 51 ]. Ayrıca, diyabetik hastaların pankreas hücrelerinde Aβ kümeleri bulundu, böylece beta hücrelerinin kaybını ve diyabetin ilerlemesini destekledi. Sonuç olarak, AD ve diyabet ortak patolojik belirtiler gösterebilir [ 52 , 53]. İkincisi, Pu ve ark. tip 2 diabetes mellitus transgenik farelerde, 28 gün boyunca intraperitoneal yoluyla uygulanan SFN'nin (1 mg/kg) kontrol farelerine kıyasla bilişsel eksiklikleri iyileştirdiğini göstermiştir. Ek olarak, immünohistokimyasal ve Western blot analizi, hipokampusta hem Ap plaklarında bir azalma hem de fosforlanmış tau seviyeleri bildirdi. SFN muhtemelen yararlı etkilerini Nrf2 aşırı ekspresyonu yoluyla beyinde sergileyebilir, HO-1 ve NQO-1'in antioksidan etkisini arttırır, böylece oksidatif stresin azalmasına yol açar [ 54 ] (bkz.tablo 1). tablo 1


    AD tedavisinde sülforafanın (SFN) etkilerini değerlendiren in vivo çalışmaların sentezi. Tabloda özellikle kullanılan modeller, tedavi türü, dozaj ve elde edilen sonuçlar açıklanmaktadır.
    PS1V97L transgenik fareler ve sıçanların birincil kortikal hücreleri SFN (5 mg/kg)
    SFN (0,1 μM)
    intraperitoneal In vivo, SFN bilişsel eksiklikleri iyileştirdi, Ap agregasyonunu ve tau hiperfosforilasyonunu inhibe etti ve ayrıca oksidatif stresi ve nöroinflamasyonu azalttı. Bunun yerine, in vitro SFN hücre canlılığını iyileştirdi ve dendritik uzunluğu korudu [ 39 ]
    Sprague-Dawley erkek sıçanlar SFN (5 mg/kg) intraperitoneal SFN, depresif davranışları iyileştirdi, oksidatif stresi ve nöroinflamasyonu azalttı [ 40 ]
    C57BL/6 fareler SFN (25 mg/kg) Oral SFN tedavisi bilişsel ve motor eksiklikleri iyileştirdi, oksidatif stresi azalttı ve hem kortekste hem de hipokampusta Aβ plaklarının oluşumunu azalttı [ 41 ]
    Kunming fareleri SFN (25 mg/kg) gavaj SFN, hipokampus ve medial septumdaki kolinerjik nöronların kaybını azaltmanın yanı sıra bilişsel eksiklikleri iyileştirdi [ 42 ]
    ICR fareleri SFN (30 mg/kg) intraperitoneal SFN, bilişsel ve hafıza açıklarını iyileştirdi, ayrıca oksidatif stresi azalttı ve Aβ agregasyonunu önledi [ 43 ]
    3 × Tg-AD fareleri SFN (10 veya 50 mg/kg) gavaj SFN, hafızayı ve öğrenme açıklarını iyileştirdi. Ayrıca, SFN, korteksteki Aβ seviyelerinin yanı sıra hipokampustaki Aβ ve tau seviyelerini azalttı. [ 50 ]
    tip 2 diabetes mellitus transgenik fareler SFN (1 mg/kg) intraperitoneal SFN bilişsel eksiklikleri iyileştirdi, ayrıca hipokampusta oksidatif stres ve Aβ agregasyonunun yanı sıra fosforile tau seviyelerini de azalttı. [ 54 ]
    Ayrı bir pencerede aç
    SFN: sülforafan; Ap: beta-amiloid; AD: Alzheimer hastalığı.

    3.2. Sülforafanın İn Vitro AD Modellerinde Etkileri
    Nrf2 ve AD arasındaki ilişkiyi araştırmak için Bahn ve ark. SFN'nin etkilerini in vitro ve in vivo olarak göstermiştir. Yazarlar, SH-SY5Y hücrelerinde SFN'nin (1 μM), Nrf2'nin aşırı ekspresyonuna yol açtığını ve amiloidogenez süreçlerinde yer alan BACE1 ve BACE1-AS'nin transkripsiyon seviyesini azalttığını gösterdi . Ek olarak, SFN tedavisi, oksidatif strese dahil olan HO-1 seviyelerinin modülasyonuna ve ayrıca Aβ agregasyonunun azalmasına yol açtı. Aksine, Nrf2 inhibisyonu, BACE1 ve BACE1-AS'nin transkripsiyon seviyesini artırarak Keap1'in aşırı ekspresyonuna yol açtı.ve sonuç olarak Aβ oluşumu. Aynı şekilde, çalışma, şiddetli AD'yi yeniden üreten bir model olan 5xFAD fareleri ve bunun yerine Ap kümeleri gösteren ve tau fosforile edilmiş 3 x Tg-AD fareleri kullanılarak in vivo yürütülmüştür. Gerçekten de, hem 5xFAD farelerinde hem de 3 x Tg-AD farelerinde, intraperitoneal, muhtemelen Nrf2 yoluyla uygulanan SFN'nin (5 veya 10 mg/kg) bilişsel eksiklikleri iyileştirdiği, BACE-1 ekspresyonunu ve Aβ agregasyonunu azalttığı gösterilmiştir. . Ek olarak, immünohistokimyasal analiz, 3 x Tg-AD farelerinde SFN'nin, doza bağlı bir mekanizmaya göre fosforile tau seviyelerini azalttığını göstermiştir. Bu nedenle çalışma, AD'ye karşı koymak için olası bir stratejinin, SFN [ 48 ] gibi Nrf2 aktivatörlerini içeren mekanizma tarafından temsil edilebileceğini doğruladı .

    SFN'nin antioksidan etkileri ve Nrf2 ile etkileşimi Masci ve ark. in vitro AD modelinde. Yazarlar, sakaroz varlığında büyütülen ve koyu veya beyaz ışığa maruz bırakılan iki ham brokoli filizi suyunun (10 μM) sinir koruyucu etkilerini fenol ve antosiyanin içeriği açısından ayırt etmek için araştırdılar. Modeli indüklemek için insan nöroblastom SH-SY5Y hücreleri Aβ 25-35 ile tedavi edildi.(25 μM) ve brokoli filizi suları. Çalışmanın sonuçları, hücreyi oksidatif stresten koruduğu bilinen moleküler bir şaperon olan HSP70'in aşırı ekspresyonu ile gösterildiği gibi, her iki meyve suyuyla tedavinin sitotoksisiteye ve Aβ'nın neden olduğu hücre ölümüne karşı koruyucu bir etki uyguladığını göstermiştir. Ayrıca yazarlar, GSH'nin hücre içi artışı ile değerlendirilen oksidatif stresin azalmasının yanı sıra muhtemelen Nrf2 sinyal yolu yoluyla indüklenen HO-1 ve NQO-1 aktivitesini de gösterdiler. Her iki meyve suyunun da benzer etkiler göstermesine rağmen, daha yüksek polifenol bileşimine sahip meyve suyunun Nrf2 aktivasyonunda daha güçlü olması dikkat çekicidir [ 55 ]. Ayrıca Lee ve ark. Aβ 25–35 ile indüklenen SH-SY5Y hücrelerinde SFN'nin etkilerini gösterdi(15 uM). SFN (1 μM, 2 μM ve 5 μM) ön tedavisinin, doza bağlı bir mekanizmaya göre hücreleri sitotoksisite ve apoptozdan koruduğu gösterilmiştir. Gerçekten de, SFN, B hücreli lenfoma-2'yi (BCL-2) yukarı doğru düzenleyerek ve ayrıca JNK ve proapoptotik protein BCL2-İlişkili X'in (BAX) aktivasyonunu azaltarak apoptozu azalttı. Ayrıca, SFN'nin anti-apoptotik aktivitesinin, NQO-1, HO-1 ve gama-glutamilsistein sentetaz gibi antioksidan enzimlerin artmasıyla gösterildiği gibi, oksidatif stresin aracılık ettiği görüldü. Aynı şekilde SFN'nin de antiapoptotik etkisini Nrf2 aracılığıyla gösterdiği gösterilmiştir. Gerçekten de, Nrf2 bloğu, SFN'nin faydalı etkilerini ortadan kaldırdı. Bu nedenle, elde edilen sonuçlar, Nrf2 yolunun aktivasyonunun, hastalığa karşı koymak için erişilebilir bir yol olabileceğini bildirdi.56 ].

    Nöroinflamatuar fonksiyonlarla bilinen mikroglial hücreler, fagositoz yoluyla zararlı Ap agregatlarını ortadan kaldırmak ve ayrıca proinflamatuar sitokinlerin salınması için AD'de incelenmiştir. Bu nedenle, Ap agregatlarını kontrol etmek için yararlı bir strateji, bir proinflamatuar yanıtı tetiklemeden mikroglial hücrelerin fagositik aktivitesinden yararlanmak olabilir [ 57].]. Chilakala et al. bir in vitro çalışmada, Ap oligomerleri (100 ng/mL, 500 ng/mL ve 1000 ng/mL) ile ön işleme tabi tutulmuş mikroglial hücrelerde SFN'nin (5 uM) etkilerini gösterdi. Çalışma, mikroglial hücrelerin, düşük Ap oligomer konsantrasyonlarında zayıf fagositik aktivite gösterdiğini bildirdi. Ayrıca, yüksek Aβ oligomer konsantrasyonlarına sahip mikroglial hücrelerde toksisiteye neden olarak fagositozu düzenleyen genlerin modülasyonuna yol açtığı gösterilmiştir. Sonuç olarak, hem düşük hem de yüksek konsantrasyonlarda Ap oligomerlerinde, SFN (5 uM) ile tedavi fagositik aktivitede bir artışa neden oldu. Ek olarak, düşük doz Ap oligomerlerinde SFN'nin proinflamatuar mikroglia mediatörlerinin salınımını desteklemediği de gösterilmiştir. Bu nedenle, çalışma, SFN'nin Aβ agregatları nedeniyle azalan mikroglial fagositozu iyileştirebileceğini göstermiştir [ 58].]. Mikroglial aktivasyon, nöroinflamasyonda anahtar bir rol oynadığından, AD gibi merkezi sinir sistemini (CNS) içeren hastalıklara karşı koyabilen anti-inflamatuar stratejilere ihtiyaç vardır [ 59].]. Subedi et al. hem in vitro hem de in vivo olarak, darbeli elektrik alanına maruz kalma yoluyla elde edilen SFN ile zenginleştirilmiş brokoli filizlerinin, glukozinolat üretimini ve mirosinaz aktivitesini arttırmanın yanı sıra SFN seviyesini arttıran etkilerini gösterdi. SFN seviyesi, yüksek performanslı sıvı kromatografisi ile elde edildi ve enjeksiyon hacmi 10 μL idi. SFN'nin etkilerini göstermek için murin mikroglia hücreleri ve nöroblastom hücreleri kullanıldı. Gerçekten de, SFN tedavisinin, hücresel tepkilerde yer alan MAPK sinyalini aşağı regüle eden bir mekanizma yoluyla iltihabı azalttığı ve hücre canlılığını iyileştirdiği gösterilmiştir. Ayrıca, lipopolisakkarit (100 ng/mL) tarafından indüklenen mikroglial aktivasyonu takiben SFN'nin inflamasyonu inhibe ettiği de gösterilmiştir. Benzer şekilde, SFN'nin Nrf2 ve HO-1'i yukarı regüle ettiği bildirildi, oksidatif stresi ve apoptozu azaltır. Ek olarak, ICR farelerinde, brokoli filizinin (200 mg/kg) oral yoldan uygulanmasının, intraperitoneal skopolamin tedavisinin (1.2 mg/kg) neden olduğu bellek eksikliklerini, muhtemelen SFN'nin aracılık ettiği Nrf2 aktivasyonu yoluyla iyileştirdiği gösterilmiştir; özellikle, kaspaz-3'ün inhibisyonunu içeren ve böylece bir nöroprotektif etki uygulayan mekanizma yoluyla [60 ]. Ayrıca, Zhao ve ark. bir hücresel AD modelinde, SFN'nin Nrf2 aracılığıyla etkilerini nasıl gösterebileceğini gösterdi. İnsan mutant amiloid öncü proteinini barındıran nöroblastoma N2a hücreleri, 48 saat boyunca SFN (1.25 ve 2.5 μM) ile tedavi edildi ve kontrol grubuyla karşılaştırıldı. SFN ile tedavi , SFN konsantrasyonunun artmasıyla orantılı olarak hücre içi Ap 1-40 ve Ap 1-42 seviyelerini azalttı . Ayrıca, SFN, MDA'nın azalması ve süperoksit dismutazın (SOD) artmasıyla değerlendirilen oksidatif stresin azalmasına yol açtı. Ayrıca, SFN'nin proinflamatuar sitokinlerin azalması yoluyla değerlendirilen inflamasyonun azalmasına yol açtığı da gösterilmiştir. Bu nedenle, çalışma, SFN'nin anti-inflamatuar etkisini Nrf2 upregülasyonu yoluyla gerçekleştirdiğini doğruladı.61 ]. SFN'nin Ap monomerleri üzerindeki anti-enflamatuar etkisi ve bu etkinin altında yatan mekanizma, An ve ark. Aβ 1-42 (10 veya 20 μM) ile indüklenen insan THP-1 makrofajlarında . SFN (5 μM) ile tedavi, hem kaspaz-1 hem de katepsin B'ye bağlı iltihaplı Nod-Benzeri Reseptör Protein 3'ün aktivasyonunu inhibe etti. Ayrıca, SFN, fosforilasyonu içeren bir mekanizma yoluyla IL-1β salgılanmasını da azalttı. sinyal dönüştürücüsü ve transkripsiyon 1 aktivatörü ve sonuç olarak Nrf2/HO-1 yolunu da aktive eder. Benzer şekilde, SFN'nin anti-enflamatuar etkisinin altında yatan mekanizma, herbimisin A (1 μM) ön tedavisi ile doğrulandı, bu, SFN gibi sinyal dönüştürücünün aktivasyonunu ve Aβ tarafından indüklenen transkripsiyon 1 aktivatörünü azalttı.1-42 . Bu nedenle, SFN, AD'deki nöroinflamasyonu azaltmak için yararlı olabilir [ 62 ]. AD'de meydana gelen kronik inflamatuar süreç, Aβ tarafından düzenlenen ve fagositoz ve sitokin üretiminde yer alan Mer tirozin kinazın düzensizliğine de yol açabilir [ 63 ]. Mekanizma tam olarak anlaşılmasa da Jhang ve ark. SFN'nin insan THP-1 makrofajlarında Mer tirozin kinaz ekspresyonunu nasıl modüle ettiğini gösterdi. Yazarlar, Aβ 1-42'nin indüksiyonunun(5, 10 ve 20 μM) Mer tirozin kinaz seviyesini aşağı regüle edebilir, hücre içi kalsiyum artışını ve NF-κB aktivasyonunu destekleyebilir ve bunun sonucunda aşırı IL-1β ve TNF-α üretimine neden olabilir ve bu da negatif olarak hareket edebilir. Mer tirozin kinaz ekspresyonunun düzenleyicileri. Bunun aksine, SFN ile ön-muamele (5 uM) önemli ölçüde Ap etkisini tersine çevirmiştir 1-42 . Ayrıca Mer tirozin kinaz bloğunun SFN'nin antiinflamatuar etkisini azalttığı gösterilmiştir. Bu nedenle, Mer tirozin kinaz yoluyla hareket eden SFN, Ap 1-42 tarafından indüklenen nöroinflamasyona karşı bir anti-inflamatuar etki gösterebilir ve böylece hastalığa karşı koymak için yararlı bir strateji olduğunu kanıtlayabilir [ 64 ].

    SFN, hücre sağkalımı ve sinaptik plastisitede yer alan BDNF aracılığıyla koruyucu etkiler de gösterebilir. Kim et al. SFN'nin etkilerini hem in vitro hem de in vivo olarak göstermiştir. In vitro olarak, ICR farelerinin kortikal nöronlarında, SFN'nin (10 veya 20 uM) BDNF ekspresyonunu arttırdığı gösterildi. Ayrıca, SFN'nin postsinaptik yoğunluk proteini 95, mikrotübül ile ilişkili protein 2 ve sinaptofizin seviyelerini arttırdığı ve ayrıca tropomyozin ile ilişkili kinaz B sinyalleme bileşenlerini aktive ettiği de gösterilmiştir. Aynı şekilde in vitro olarak elde edilen sonuçlar in vivo olarak da doğrulanmıştır; aslında, 3 x Tg-AD farelerinde, sekiz hafta boyunca gavaj yoluyla SFN (10 veya 50 mg/kg/gün) tedavisinin, korteks ve hipokampusta BDNF seviyelerinde bir artış belirlediği gösterilmiştir. Ayrıca SFN, sinaptofizin gibi presinaptik proteinlerin seviyelerini de arttırdı. mikrotübül ile ilişkili protein 2 ve postsinaptik yoğunluk proteini 95. Kayda değer bir şekilde, kortekste olduğu gibi, SFN tedavisi ayrıca tropomiyosin ile ilişkili kinaz B sinyalleşme bileşenlerini aktive ederek nöronal hayatta kalmayı teşvik etti. Bu nedenle, BDNF promotör bölgelerinin histon asetilasyonunun azalmasının yanı sıra ekspresyon seviyelerinin artmasıyla gösterildiği gibi, SFN'nin etkisini BDNF aracılığıyla oynayabileceği doğrulandı.65 ].

    Ek olarak, AD hastalarının beyinlerinde, p75 nörotrofin reseptörünün (p75 NTR ) ekspresyon düzeylerinde bir azalma da gösterilmiştir [ 66 , 67 , 68 ]. SFN, AD'nin patogenezinde anahtar rol oynayan p75 NTR'nin ekspresyonunu da modüle edebilir [ 69 ]. Gerçekten de, p75 NTR geninin silinmesinin Ap agregatlarının artışını desteklediği gözlemlenmiştir [ 70 ]. Bu nedenle, p75 NTR'nin düzenlenmesibeyinde Aβ kümelerinin oluşumunu azaltmak için yararlı bir terapötik strateji olabilir. Zhang et al. SFN'nin nöroprotektif etkilerine p75 NTR'nin yukarı regülasyonu aracılık edip etmediği, hem in vitro hem de in vivo olarak araştırıldı . İnsan SH-SY5Y nöroblastom hücreleri, SFN (2 uM) ile ön işleme tabi tutuldu ve ardından farklı Ap konsantrasyonlarına (10-80 uM) maruz bırakıldı. SFN ile tedavi, Aβ (40 ve 80 uM) tarafından indüklenen hücre canlılığının azalmasını önledi. Ek olarak, SH-SY5Y hücrelerinde, SFN tedavisi hem mRNA'nın azalmasını hem de p75 NTR proteininin ekspresyon seviyesini korumuştur . Bu nedenle, SFN'nin etkisini p75 NTR'nin yukarı regülasyonu yoluyla da gösterebileceği gösterilmiştir., histon deasetilaz 1 ve 3'ün susturulmasıyla elde edilen sonuçları in vitro doğrulamak için çalışma in vivo olarak gerçekleştirilmiştir. Gerçekten de, APP/presenilin1 çift transgenik farede gavaj yoluyla SFN'nin (25 mg/kg) uygulanmasının kognitif eksiklikleri iyileştirdiği ve hayvanların korteksindeki Ap plak artışını koruduğu gösterilmiştir. Ayrıca Western Blot ve polimeraz zincir reaksiyonu analizi, kortekste SFN'nin mRNA ve p75 NTR protein ekspresyonunun azalmasıyla korunduğunu gösterdi . Bu nedenle çalışma, SFN'nin p75 NTR'yi yukarı doğru düzenleyerek ve histon asetilasyonunu düzenleyerek Aβ agregasyonunu önleyebileceğini ve dolayısıyla AD'de yararlı bir etki gösterebileceğini göstermiştir [ 71 ] (bkz.Tablo 2).

    Tablo 2
    Bu tablo, AD tedavisinde SFN'nin etkilerini bildiren in vitro çalışmaları göstermektedir. Tabloda özellikle deneysel çalışmalarda kullanılan modeller, tedavi tipi, dozaj ve elde edilen sonuçlar açıklanmaktadır.
    SH-SY5Y hücreleri ve 5xFAD
    ve
    3 x Tg-AD fareleri
    SFN (1 μM)
    SFN (5 veya 10 mg/kg)
    .
    intraperitoneal
    In vitro, SFN tedavisi amiloidogenezde ve oksidatif streste bir azalmaya yol açtı. İn vivo SFN uygulaması, bilişsel eksiklikleri iyileştirirken ve Aβ agregasyonunu azalttı [ 48 ]
    SH-SY5Y hücreleri Brokoli filizlerinin ham suları (10 μM) . Brokoli suları ile tedavi, hücre ölümünü ve Aβ kaynaklı oksidatif stresi azalttı [ 55 ]
    SH-SY5Y hücreleri SFN (1 μM, 2 μM ve 5 μM) . SFN, hücreleri Aβ 25 – 35 tarafından indüklenen sitotoksisite ve apoptozdan korudu . Ayrıca, SFN tedavisi oksidatif stresi azalttı [ 56 ]
    mikroglial hücreler SFN (5 µM) . SFN tedavisi, Aβ agregatları nedeniyle azaltılan mikroglia fagositozunu iyileştirdi [ 58 ]
    Murin mikroglia hücresi BV2 ve nöroblastom hücresi N2a
    ve
    erkek ICR fareleri
    SFN ile zenginleştirilmiş brokoli filizi 10 µl
    Brokoli filizi (200 mg/kg)
    .
    Oral
    In vitro, SFN tedavisi inflamasyonu, oksidatif stresi ve apoptozu azalttı. İn vivo iken, SFN uygulaması hafıza açıklarını iyileştirdi [ 60 ]
    Nöroblastom N2a hücreleri SFN (1,25 ve 2,5 μM) . SFN tedavisi , doza bağlı bir şekilde Ap 1 – 40 ve Aβ 1 – 42 seviyelerini azalttı . Ayrıca, SFN oksidatif stresi ve nöroinflamasyonu azalttı. [ 61 ]
    İnsan THP-1 makrofajları SFN (5 μM) . SFN tedavisi Aβ 1 – 42 ile indüklenen makrofajlarda nöroinflamasyonu azalttı [ 62 ]
    İnsan THP-1 makrofajları SFN (5 μM) . Mer tirozin kinaz yoluyla SFN, Aβ 1 – 42 tarafından indüklenen bir anti-inflamatuar etki gösterebilir [ 64 ]
    ICR farelerinin
    ve
    3 x Tg-AD farelerinin kortikal nöronları
    SFN (10 veya 20 µm)
    SFN (10 veya 50 mg/kg)
    .
    gavaj
    Hem in vitro hem de in vivo, SFN tedavisi korteks ve hipokampusta nörodejenerasyonun azalmasına yol açtı [ 65 ]
    APP/presenilin1 çift transgenik fare
    ve SH-SY5Y hücreleri
    SFN (25 mg/kg)
    SFN (2 μM)
    Gavaj
    .
    In vivo SFN, bilişsel eksiklikleri iyileştirdi ve korteksi Aβ agregatlarının artışından korudu. In vitro olarak, SFN hücre canlılığındaki azalmayı engelledi [ 71 ]
    Ayrı bir pencerede aç
    SFN: sülforafan; Ap: beta-amiloid; AD: Alzheimer hastalığı; APP: amiloid öncü proteini.

    Git: 4. Parkinson Hastalığının Deneysel Çalışmalarında Sülforafanın Etkileri
    PD, bradikinezi, kas sertliği ve titreme gibi bilişsel ve motor bozukluklarla karakterize nörodejeneratif bir hastalıktır. Hastalık, substantia nigra compacta'daki dopaminerjik nöronların ilerleyici kaybını ve ayrıca Lewy cisimcikleri olarak bilinen α-sinüklein inklüzyonlarını içerir [ 33 ]. PD hastalarının ölüm sonrası beyninde oksidatif stres ve substantia nigra'dan GSH kaybı gibi çeşitli zararlı olaylar tespit edilmiştir [ 72 , 73 ]. Aslında, oksidatif stres, yaşlanma ve apoptozu ve dopaminerjik nöronların ölümünü teşvik eden nörotoksik bileşiklere maruz kalma gibi uyaranlar yoluyla dopaminerjik nöronların hassasiyetini artıran patolojik bir değişikliktir [ 74].]. Bu nedenle, hem oksidatif stres hem de GSH kaybı, AD hastalarının ölüm sonrası beyninin önemli nigrasında bulunan nöronlarda nükleer seviyesinin artmasıyla ve ayrıca anormal varlığı ile gösterildiği gibi, Nrf2 aktivitesini indüklediği bilinen olaylardır. Lewy cisimciklerinde Keap1 [ 75 , 76 ]. PD'de Nrf2 aktivitesinin indüklendiğini doğrulamak için, Nrf2 tarafından düzenlenen bazı proteinlerin ekspresyonunun düzensiz olduğu da gösterildi. Gerçekten de, PD hastalarının beyninde yüksek NQO-1 ve HO-1 seviyeleri bulunmuştur [ 77 ]. Nrf2'nin endojen ekspresyonu hücre ölümünü önleyemediğinden, SFN gibi Nrf2 aktivatör bileşiklerine dayalı bir strateji, nörodejenerasyonu önlemek ve hastalığa karşı koymak için faydalı olabilir [ 78].]. Hem in vitro hem de in vivo birkaç deneysel çalışma, SFN'nin PD'deki etkinliğini göstermiştir.

    4.1. Sülforafanın İn Vitro PD Modellerinde Etkileri
    Niso-Santano et al. PD'de Nrf2'nin rolünü in vitro olarak araştırdı. PD modelini indüklemek için SH-SY5Y insan nöroblastom hücreleri, 24 saat boyunca bir konsantrasyon aralığında (0-100 uM) parakuat ile tedavi edildi. Modelin uyarılması, apoptoz sinyal düzenleyici kinaz 1'in (ASK1, MAP3K5 olarak da bilinir) aktivasyonu ve ayrıca JNK ve p38'in aktivasyonu ile ilgili olarak ROS ve hücre ölümünün artmasına neden oldu. Buna karşılık, modeli indüklemeden önce SFN (5 uM) ön tedavisinin veya E vitamininin ASK1 sinyal yolunu bloke ettiği ve hem oksidatif stresi hem de hücre ölümünü önlediği gösterildi. PD'de E vitamini ile tedavi çelişkili sonuçlar gösterdiğinden, yazarlar tioredoksin seviyelerinin modülasyonu yoluyla fare embriyonik fibroblastları ve SH-SY5Y hücrelerindeki antioksidan kapasiteyi değerlendirdi. Nrf2'nin tioredoksinin gen ekspresyonunu modüle etmesi kayda değerdir; gerçekten de, Nrf2 eksikliği olan fibroblastlarda saptanamayan tioredoksin seviyeleri gösterildi. Aksine, SFN (5 uM) ile ön işleme tabi tutulmuş SH-SY5Y hücrelerinde ve hem yüksek düzeyde tioredoksin hem de hücre ölümünün azalması olan Keap1 eksikliği olan fibroblastlarda da gösterilmiştir. Bu nedenle çalışma, Nrf2/tioredoksin eksenini PD'de oksidatif stres ve nörodejenerasyona karşı koymak için yararlı bir terapötik hedef olarak tanımladı [79 ]. Bao et al. 1-metil-4-fenil-1,2,3,6-tetrahidropiridinin toksik oksitlenmiş türlerini temsil eden 1-metil-4-fenil piridin (MPP + ) ile indüklenen PC12 farklılaşmamış hücrelerde SFN'nin etkisini gösterdi ( MPTP). Modeli indüklemek için, PC12 hücreleri MPP + (100, 300, 500 ve 700 µmol/L) ile farklı zaman periyotlarında (12, 24 ve 48 saat) inkübe edildi ve hücre canlılığı ve apoptoz değerlendirildi. . MPP + ile 24 maruziyetten önce bir saat boyunca SFN (0.5, 1.0, 2.5, 5.0 ve 10 µmol/L) ile ön tedavi(500 µmol/L), oksidatif stresin neden olduğu hücre hasarını önemli ölçüde azaltmıştır. Gerçekten de, SFN bu koruyucu etkiyi, MPP +'dan sonra azalan HO-1 ve NQO-1 ekspresyonunun azalmasındaki geri dönüşle gösterildiği gibi, muhtemelen Nrf2-ARE yolunun yukarı regülasyonu yoluyla uygulamıştır . Sonuç olarak, SFN ayrıca oksidatif stresi azaltmış ve hücre hasarını önlemiştir [ 80].]. SFN'nin nöroprotektif etkileri de Deng ve ark. 24 saat boyunca 6-hidroksidopamin (6-OHDA) (80 uM) ile indüklenen PC12 hücrelerinde. 6 saat boyunca SFN (0,1, 1 ve 5 uM) ön tedavisi, hücre canlılığında bir artışa yol açtı ve doza bağlı bir şekilde 6-OHDA'nın neden olduğu hücre ölümünü inhibe etti. Yazarlar ayrıca endoplazmik retikulum stresi ile ilgili moleküllerin ekspresyonunu değerlendirerek SFN'nin sitoprotektif etkilerini de gösterdiler. Endoplazmik retikulum, proteinlerin işlenmesi ve katlanmasında olduğu kadar kalsiyum sinyallemesinde de önemli olduğu için, PD'de oksidatif stresin endoplazmik retikulum fonksiyonunun ve ayrıca bunlarla ilişkili sinyal yollarında değişikliğe yol açabileceği gösterilmiştir. . Gerçekten de stres koşulları altında endoplazmik retikulumda, her iki değişiklik de kalsiyum homeostazında ve yanlış katlanmış proteinlerin birikmesinde meydana gelir ve bunun sonucunda katlanmamış protein tepki yolunun aktivasyonu gerçekleşir. Ek olarak, ökaryotik başlatma faktörü 2a'nın fosforilasyonunun, protein sentezinin azalmasını içerdiği bulundu. Benzer şekilde, Binding Immunoglobulin Protein gibi moleküler şaperonların aktivasyonu, doğru protein katlanmasında yer aldığı gösterilmiştir. Bununla birlikte, endoplazmik retikulum fonksiyonunun ciddi şekilde bozulup bozulmadığı, C/EBP homolog proteinindeki artışın gösterdiği gibi apoptotik yol aktive olur. Bunun yerine, SFN (5 uM) ile tedavi, her ikisi de 6-OHDA indüksiyonundan sonra değişen Binding Immunoglobulin Protein ve C/EBP homolog protein ekspresyon seviyeleri tarafından bildirildiği gibi, endoplazmik retikulumda stresi azaltarak sitoprotektif bir rol göstermiştir. Aynı şekilde Nrf2 aracılığıyla endoplazmik retikuluma uygulanan streste SFN'nin etki edebildiği gösterilmiştir. Gerçekten de, Nrf2 bloğunun, 6-OHDA ile indüklenen PC12 hücrelerinde SFN'nin sitoprotektif etkilerini önlediği gösterilmiştir.81]. Ek olarak, aynı araştırma grubu, 24 saat boyunca 6-OHDA (40 veya 80 uM) ile indüklenen PC12 hücrelerinde SFN'nin etkilerini gösterdi. 24 saat süreyle SFN (1 ve 5 uM) ön tedavisi, hücre canlılığı ve ayrıca kaspaz-3 aktivitesini azaltarak değerlendirilen hücre hasarını önledi. Ayrıca, SFN'nin sitoprotektif etkisini, Nrf2'nin aktivasyonu ve ardından çekirdeğe translokasyonu yoluyla uyguladığı ve bunun sonucunda fosfatidilinositol-3-kinaz (PI3K)/AKT yolunun aktivasyonunun aracılık ettiği HO-1 ekspresyon seviyesinde bir artış gösterdiği gösterilmiştir. SFN tarafından PI3K/Akt aktivasyonunun doğrulanması, SFN'nin yararlı etkilerini bloke eden LY294002 ile ön işleme tabi tutulmuş PC12 hücresinde gösterilmiştir. ifade seviyeleri. Öyleyse,82 ]. Oksidatif stres ve inflamasyon, PD'nin ilerlemesinde anahtar faktörlerdir; sonuç olarak, Nrf2 aktivitesini arttırma stratejileri, oksidatif stres ve nörodejenerasyona karşı koymak için faydalı olabilir [ 83]]. Sibert et al. 6-OHDA (100 nM) ile indüklenen organotipik sıçan nigrostriatal kültürlerinin dopaminerjik nöronlarında Nrf2 aktivatörleri, SFN ve tert-butilhidrokinonun etkilerini göstermiştir. Organotipik Kültürler, 16 saat boyunca SFN (5 uM) ve 6-OHDA (100 nM) ile kombine tedaviden önce 48 saat boyunca SFN (5 uM) ile işlendi. Aynı şekilde, tert-butilhidrokinonun (50 uM) etkileri, tert-bütilhidrokinon (50 uM) ve 6-OHDA'nın (100 nM) 16 saat daha kombine tedavisinden önce 8 saat süreyle test edildi. İmmünohistokimyasal analiz, hem SFN'nin hem de tert-butilhidrokinonun, 6-OHDA tarafından indüklenen nigrostriatal nörodejenerasyonu azalttığını gösterdi. Ayrıca, SFN ve tert-butilhidrokinonun kombine tedavisinin, nörodejenerasyon yoluyla nigrostriatal nöronları neredeyse tamamen koruduğu gösterilmiştir. muhtemelen NQO-1 gibi antioksidan enzimlerin aktivitesindeki artışın aracılık ettiği bir mekanizma yoluyla. Bu nedenle, SFN gibi Nrf2 aktivatörleri, PD'de dopaminerjik nöronların dejenerasyonuna karşı koymak için faydalı olabilir.84 ]. İzumi et al. 24 saat boyunca 6-OHDA (250 uM) ile indüklenen PC12 hücrelerinde ve ayrıca birincil mezensefalik kültürlerde, bir Nrf2 aktivatörü olan TPNA10168'in koruyucu etkilerini gösterdi. PC12 hücrelerinde TPNA10168 (0.1–30 uM) ile tedavi, NQO-1 yukarı regülasyonu yoluyla bir nöroprotektif etki göstermiştir. Benzer şekilde, birincil mezensefalik kültürlerde TPNA10168'in astrositlerde HO-1'i yukarı regüle ettiği ve böylece dopaminerjik nöronları nörodejenerasyondan koruduğu da gösterilmiştir. Ayrıca, TPNA10168, Nrf2'yi aktive etmede daha fazla etkinlik ve dolayısıyla daha iyi bir antioksidan etki ve ayrıca SFN'ye (0,1–10 µM) kıyasla daha düşük sitotoksisite gösterdi [ 85]. Vauzour et al. PD hastalarında da bulunan bir dopamin oksidasyon metaboliti olan 5-S-Sisteinil-dopamin (100 uM) ile indüklenen farenin birincil kortikal nöronlarında SFN'nin nöroprotektif etkilerini gösterdi. 5-S-Sisteinil-dopamin kaynaklı hücre ölümü ile 24 saat korunan nöronlar için SFN (0.01–1 μM) ön tedavisi. Ek olarak, SFN'nin Nrf2'nin yer değiştirmesini ve bunun sonucunda NQO-1 ve GSH-S-transferaz gibi antioksidan enzimlerin aktivitesindeki artışı indüklemesinden ayrı olarak, ERK 1/2 ve proteinin aktivasyonunu da içerdiği görülmüştür. hayatta kalma ve büyüme hücresinde yer alan kinaz B yolakları [ 86]. NQO-1 gibi antioksidan enzimlerin aktivasyonu, oksidatif stresin yanı sıra bunun sonucunda dopaminerjik nöron kaybına karşı koymak için çok önemlidir. Bu nedenle, SFN gibi güçlü NQO-1 aktivatörleri, dopaminin dopamin kinona oksidasyonunu ve ardından nöronal kırılganlığı önlemek için faydalıdır [ 87 , 88]]. Han ve ark. CATH.a ve SK-N-BE (2) C dopaminerjik hücre hatlarında ve (50 μM) veya tetrahidrobiopterin ile indüklenen 6-OHDA mezensefalik dopaminerjik nöronlarda SFN'nin (0.5, 1, 2.5 ve 5 μM) etkilerini gösterdi ( 200 uM). SFN ile ön tedavi, dopaminerjik nöronları ve mezensefalik nöronları 6-OHDA ve tetrahidrobiopterin tarafından indüklenen nörodejenerasyondan korudu, böylece dopamin kinon üretimi, oksidatif stres ve nöronal hasar önlendi. Ayrıca, SFN işleminin hem ROS üretimini hem de membran hasarını önlediği de gösterilmiştir. Sonuç olarak, SFN, NQO-1 aktivitesinin artmasını destekleyerek dopamin kinonunun hücre içi uzaklaştırılmasına ve böylece nörodejenerasyonun önlenmesine yol açmıştır [ 89].]. SFN'nin antioksidan etkisi Tarozzi ve ark. 3 saat süreyle hidrojen peroksit (H 2 O 2 ) (300 µmol/L) veya 6-OHDA (100 µmol/L) ile indüklenen SH-SY5Y nöroblastom hücrelerinde . SFN (0.63–5 μmol/L) ön tedavisi GSH, GSH transferaz ve NQO-1 düzeylerini artırdı. Benzer şekilde, SFN'nin sitoprotektif rolünü değerlendirmek için, butiyonin sülfoksimin ile tedavinin GSH aktivitesini ve dolayısıyla SFN'nin sitoprotektif etkilerini inhibe ettiği gösterilmiştir. Ayrıca, SFN tedavisi, kaspaz 9 ve 3'ün aktivasyonunu, DNA parçalanmasını ve mitokondriyal hasarı önleyerek nekroz ve apoptozu önledi. Bu nedenle birlikte ele alındığında, bu sonuçlar SFN'nin PD başlangıcını önlemek için yararlı olabileceğini göstermektedir [ 90].]. Dopaminerjik nöronların spesifik özelliklerini ve ayrıca ürotelyal, insan embriyonik böbrek hücreleri ve dopamin taşıyıcılarını dopaminerjik olmayan hücreler olarak aşırı ifade eden insan embriyonik böbrek gibi diğer hücre dizilerinde yeniden üretmek için Shavali ve ark. SH-SY5Y nöroblastom hücrelerinde SFN ve N-asetilsisteinin antioksidan etkilerini araştırdı. Deneysel modeli başlatmak için yazarlar, dopaminerjik hücrelerin nörodejenerasyonunu indüklemek için bir arsenit (10 μM) ve dopamin (100 μM) karışımı kullandılar. 24 saat süreyle (0,1-5 μM) aralığında SFN ile ön işlemin, arsenit karışımı ve dopamin tarafından indüklenen hücre ölümünü önemli ölçüde inhibe ettiği gösterilmiştir. Aynı şekilde, N-asetilsisteinin (100 μM, 1 mM ve 10 mM) arsenit karışımı ve dopamin ile inkübasyonu hücre ölümünün azalmasına neden oldu, doza bağımlı bir mekanizmaya göre. Bu nedenle, SFN ve N-asetilsisteinin antioksidan etkisine kısmen hücre içi olaylar aracılık etmiştir; aslında, dopamin-kinon redüktaz enzimini aktive eden SFN, canlılık kaybıyla SH-SY5Y hücrelerini korumuştur. Benzer şekilde, tiyol grubu aracılığıyla serbest radikal süpürücü olarak hareket eden N-asetilsistein, GSH sentezini geliştirerek oksidatif stresi azaltır ve böylece sonraki nöronal hasardan korunur.91]. Bu nedenle, Nrf2'nin aracılık ettiği dopaminerjik nöronlardaki GSH artışı, PD'ye karşı koymak için umut verici bir strateji olabilir. İkincisi durumunda, SFN gibi Nrf2 aktivatörleri ve erusin gibi metabolitleri, araştırmacılar tarafından faydalı etkileri için araştırıldı. Morroni et al. SFN ve erusin'in hem in vitro hem de in vivo etkilerini karşılaştırdılar. 6-OHDA (100 μM) ile indüklenen SH-SY5Y'de SFN (5 μM) ön tedavisi, erusin (5 μM) tedavisine kıyasla aktif nükleer Nrf2 proteininde daha fazla artış ve ayrıca apoptozda daha fazla azalma gösterdi. Bu etkiler ayrıca muhtemelen SFN'nin oligosomlarda DNA parçalanmasını azaltma yeteneğinden kaynaklanıyordu. Bunun yerine, aynı 5 μM dozda SFN ve erusin eşzamanlı tedavisi, muhtemelen ikincisinde, benzer koruyucu etkiler göstermiştir, SFN ve erusin, nükleer protein Nrf2 ve GSH seviyelerinin artışını önemli ölçüde arttırdı. İn vitro elde edilen sonuçları doğrulamak için, yazarlar çalışmayı tek taraflı olarak 6-OHDA'nın (2 μL) stereotaksik intrastriatal enjeksiyonu ile uygulanan erkek C57Bl/6 farelerinde gerçekleştirdiler. Çalışma sonuçları, yaralanmadan dört hafta sonra aynı dozda SFN (30 μmol/kg) veya erusin ile intraperitoneal tedavinin davranış testlerinde yanıtı iyileştirdiğini gösterdi. Ek olarak, müteakip immünohistokimyasal analiz, her iki izotiyosiyanatla yapılan tedavinin dopaminerjik nöronların kaybını ve apoptozu azalttığını göstermiştir. Çalışma sonuçları, yaralanmadan dört hafta sonra aynı dozda SFN (30 μmol/kg) veya erusin ile intraperitoneal tedavinin davranış testlerinde yanıtı iyileştirdiğini gösterdi. Ek olarak, müteakip immünohistokimyasal analiz, her iki izotiyosiyanatla yapılan tedavinin dopaminerjik nöronların kaybını ve apoptozu azalttığını göstermiştir. Çalışma sonuçları, yaralanmadan dört hafta sonra aynı dozda SFN (30 μmol/kg) veya erusin ile intraperitoneal tedavinin davranış testlerinde yanıtı iyileştirdiğini gösterdi. Ek olarak, müteakip immünohistokimyasal analiz, her iki izotiyosiyanatla yapılan tedavinin dopaminerjik nöronların kaybını ve apoptozu azalttığını göstermiştir.92 ] (bkz.Tablo 3).

    Tablo 3
    PD tedavisinde SFN'nin etkilerini değerlendiren in vitro çalışmaları özetledik. Spesifik olarak, kullanılan modelleri, dozajı, uygulama türünü ve sonuçları tanımladık.
    SH-SY5Y hücreleri
    ve
    Fare embriyonik fibroblastları
    SFN (5 µM) . SFN, oksidatif stresi ve hücre ölümünü azalttı [ 79 ]
    PC12 hücreleri SFN (0,5, 1,0, 2,5, 5,0 ve 10 µmol/L) . SFN ön tedavisi, oksidatif stresin neden olduğu hücre hasarını azalttı [ 80 ]
    PC12 hücreleri SFN (0,1, 1 ve 5 µM) . SFN, hücre canlılığında bir artışa yol açtı ve hücre ölümünü inhibe etti. Ek olarak, SFN ayrıca endoplazmik retikulumda stresi de azalttı. [ 81 ]
    PC12 hücreleri SFN (1 ve 5 µM) . SFN ile ön işlem, 6-OHDA'nın neden olduğu hücre hasarını önledi [ 82 ]
    organotipik sıçan nigrostriatal kültürlerinin dopaminerjik nöronları SFN (5 μM) . SFN ve tert-butilhidrokinon, nigrostriatal nörodejenerasyonu azalttı [ 84 ]
    PC12 hücreleri ve
    birincil mezensefalik kültürler
    TPNA10168 (0,1–30 µM)
    ve
    SFN ( 0,1–10 µM)
    . Hem TPNA10168 hem de SFN tedavisi, dopaminerjik nöronları nörodejenerasyondan korudu [ 85 ]
    farenin birincil kortikal nöronları SFN (0,01–1 μM) . SFN ön tedavisi nöronları hem hücre ölümünden hem de oksidatif stresten korudu [ 86 ]
    CATH.a
    ve SK-N-BE (2) C
    ve mezensefalik dopaminerjik nöronlar
    SFN (0,5, 1, 2,5 ve 5 μM) . SFN, nöronları nörodejenerasyondan korudu, oksidatif stresi azalttı ve NQO-1 aktivitesinin artışını destekledi [ 89 ]
    SH-SY5Y hücreleri SFN (0,63–5 µmol/L) . SFN ön tedavisi oksidatif stresi azalttı ve nekroz ve apoptozu önledi [ 90 ]
    SH-SY5Y hücreleri ve ayrıca ürotelyal, insan embriyonik böbrek hücrelerinde SFN (0,1–5 μM) . SFN ve N-asetilsistein ile tedavi, oksidatif stresi ve bunun sonucunda arsenit ve dopamin karışımının neden olduğu nöronal hasarı azalttı. [ 91 ]
    SH-SY5Y hücreleri
    ve
    C57Bl/6 fareleri
    SFN (5 μM)
    SFN (30 μmol/kg)
    .
    intraperitoneal
    In vitro, SFN ön tedavisi hücre sağkalımını arttırdı. İn vivo olarak, SFN davranışsal eksiklikleri iyileştirirken, dopaminerjik nöron ve apoptoz kaybını azalttı. [ 92 ]
    Ayrı bir pencerede aç
    SFN: sülforafan; 6-OHDA: 6-hidroksidopamin; NQO-1: nikotinamid adenin dinükleotid fosfat kinon oksidoredüktaz-1.

    4.2. Sülforafanın In Vivo PD Modellerinde Etkileri
    Morroni et al. ayrıca SFN'nin etkilerini intrastriatal 6-OHDA (2 μL) enjeksiyonu ile uygulanan erkek C57Bl/6 farelerinde de göstermiştir. Model indüksiyonundan dört hafta sonra hayvanlar, intraperitoneal yoluyla SFN (5 mg/kg) ile tedavi edildi. SFN tedavisi, sonraki immünohistokimyasal analizlerle gösterildiği gibi, 6-OHDA'nın neden olduğu motor eksiklikleri iyileştirdi ve sustantia nigra'daki nöronları dejenerasyondan korudu. Aynı şekilde SFN, DNA parçalanmasını ve kaspaz-3 aktivasyonunu bloke ederek nöronal hücreleri apoptozdan korumuştur. Ek olarak, SFN'nin nöroprotektif rolü, GSH seviyelerinin ve enzimlerinin artmasıyla kolorimetrik analiz ve ayrıca Nrf2 up-regülasyonu ve ERK 1/2 yolunun modülasyonu yoluyla değerlendirildi. Bu nedenle çalışma, SFN'nin oksidatif stres ve apoptoz modülasyonu yoluyla,93]. Zhou et al. erkek C57BL/6 farelerinde intraperitoneal yolla uygulanan SFN'nin (50 mg/kg), art arda 60 gün boyunca uygulanan rotenon (30 mg/kg) ile oral yoldan indüklenen etkilerini araştırdı. SFN ile tedavi, rotenonun neden olduğu motor eksiklikleri ve dopaminerjik nöronal kaybı önledi. Ayrıca, Nrf2 yoluyla SFN'nin, MDA ve GSH seviyeleri ile değerlendirilen oksidatif stresi azalttığı gösterilmiştir. Ayrıca Western Blot analizi, hem Nrf2 ekspresyonunda hem de antioksidan enzimler NQO-1 ve HO-1'de bir artış gösterdi. Ek olarak, rotenon ile tedavi, hücre metabolizması, büyüme, çoğalma ve hayatta kalma ile ilgili mTor sinyal yolunu negatif olarak düzenleyerek hücre ölümüne ve düzensiz otofajiye neden oldu. Bu nedenle, SFN, bileşenleri aracılığıyla mTor sinyal yolunu aktive ederek etkilerini uygulayabilir, p70 S6 kinazın fosforilasyonu ve bunun aşağısında bulunan ökaryotik başlatma faktörü 4E. Ayrıca, SFN'nin rotenon ile indüksiyondan sonra artan kaspaz 3'ün aktivitesini bloke ederek apoptoza karşı koyabildiği de gösterilmiştir. Ayrıca SFN, rotenon ile tedaviyi takiben azalan LC3-II seviyelerindeki azalmayı bloke ederek otofajiyi de modüle edebilir.94 ]. PD patogenezinin altında yatan mekanizmalar tam olarak anlaşılmasa da diyet gibi çevresel faktörler de hastalık riskinin azaltılmasında yardımcı olmaktadır. Pu et al. bir gıda pelet olarak uygulanan SFN'nin öncüsü olan glukorafaninin, korpus striatumdaki dopaminerjik nöronların kaybını etkileyip etkilemediğini araştırdı. Erkek C57BL/6 fareleri, 28 gün boyunca glukorafaninden zenginleştirilmiş pelet veya normal pelet ile beslendi. Deneysel modeli indüklemek için hayvanlara intraperitoneal yoldan MPTP (10 mg/kg) infüze edildi ve kontrol hayvanları ile karşılaştırıldı. Çalışma sonuçları, %0.1 glukorafanin peletiyle yapılan tedavinin, dopaminerjik nöronları, tirozin hidroksilaz için immünoreaktivite yoluyla değerlendirilen nörodejenerasyondan koruduğunu göstermiştir [ 95].]. Ek olarak, Jazwa ve diğerleri, arka arkaya beş gün boyunca MPTP (30 mg/kg) ile intraperitoneal yolla indüklenen MPTP fare modelinde, intraperitoneal yolla uygulanan SFN'nin (50 mg/kg) nöro-koruyucu etkilerini göstermiştir. Çalışma, SFN'nin Nrf2 aracılığıyla etki ederek, MPTP tarafından indüklenen hem nigrostriatal nörodejenerasyonu hem de nöroinflamasyonu azalttığını göstermiştir. Gerçekten de, SFN, bazal gangliyonlarda Nrf2 seviyelerinde bir artışa ve bunun sonucunda NQO-1 ve HO-1'in yukarı regülasyonuna yol açarak oksidatif stresi azalttı. SFN'nin etkilerini uyguladığı etki mekanizması, Nrf2-KO fareleri kullanılarak açıklandı. Gerçekten de, Nrf2-KO farelerinde vahşi tip farelere kıyasla, SFN ile tedavinin hayvanları ne dopaminerjik nöronların nörodejenerasyonundan ne de nöroinflamasyondan korumadığı gösterilmiştir. astrogliosis, mikrogliozun azaltılması ve proinflamatuar sitokinlerin salınımı ile değerlendirilir. Ayrıca, aktivatörlerin yokluğunda Nrf2'nin kısa bir yarı ömre sahip olduğu; aslında Nrf2 sitoplazmik seviyesinde, UPS yoluyla bunun sonucunda bozunmasını belirleyen Keap1 proteini ile bir kompleks oluşturur. Bunun yerine, SFN gibi Nrf2 aktivatörleri, bunun çekirdeğe translokasyonunu ve ardından faz II genlerinin transkripsiyonunu indükler. Bu nedenle, SFN'nin potansiyel bir nöroprotektif indükleyici olarak enzimlerin ve faz II'nin antioksidan moleküllerinin etkileri, hastalığa karşı koymak için faydalı olabilir. UPS yoluyla bunun sonucunda bozunmasını belirleyen Keap1 proteini ile bir kompleks oluşturur. Bunun yerine, SFN gibi Nrf2 aktivatörleri, bunun çekirdeğe translokasyonunu ve ardından faz II genlerinin transkripsiyonunu indükler. Bu nedenle, faz II enzimlerinin ve antioksidan moleküllerinin potansiyel bir nöroprotektif indükleyicisi olarak SFN'nin etkileri, hastalığa karşı koymak için faydalı olabilir. UPS yoluyla bunun sonucunda bozunmasını belirleyen Keap1 proteini ile bir kompleks oluşturur. Bunun yerine, SFN gibi Nrf2 aktivatörleri, bunun çekirdeğe translokasyonunu ve ardından faz II genlerinin transkripsiyonunu indükler. Bu nedenle, faz II enzimlerinin ve antioksidan moleküllerinin potansiyel bir nöroprotektif indükleyicisi olarak SFN'nin etkileri, hastalığa karşı koymak için faydalı olabilir.96 ] (bkz.Tablo 4). Tablo 4


    Tablo, SFN'nin PD'deki etkilerini değerlendiren in vivo çalışmaları özetlemektedir. Özellikle kullanılan modelleri, dozajı, uygulama tipini ve sonuçları tanımladık.
    C57Bl/6 fare SFN (5 mg/kg) intraperitoneal SFN uygulaması motor açıkları iyileştirdi ve nöronları nörodejenerasyon ve apoptozdan korudu [ 93 ]
    C57Bl/6 fare SFN (50 mg/kg) intraperitoneal SFN tedavisi, motor açıkları ve dopaminerjik nöronların kaybını önledi. Ayrıca, SFN oksidatif stresi azalttı [ 94 ]
    C57Bl/6 fare %0.1 glukorafanin pelet Oral %0,1 glukofanin peletiyle yapılan tedavi, dopaminerjik nöronları nörodejenerasyondan korumuştur. [ 95 ]
    Yabani tip fareler
    ve
    Nrf2-KO fareleri
    SFN (50 mg/kg) intraperitoneal Yabani tip farelerde, Nrf2 aracılığıyla hareket eden SFN, hem nigrostriatal nörodejenerasyonu hem de nöroinflamasyonu hafifletti [ 96 ]
    SFN: sülforafan; Nrf2: nükleer faktör eritroid 2 ile ilgili faktör 2; KO: nakavt.

    Git: 5. Multipl Sklerozun Deneysel Çalışmalarında Sulforafanın Etkileri
    MS, esas olarak kadınlarda görülen otoimmün ve demiyelinizan nörodejeneratif bir hastalıktır. Hastalık, motor bozukluk, yorgunluk, ağrı, depresyon, görme sorunları ve mesane, bağırsak ve cinsel işlev bozukluğu gibi çeşitli semptomlarla karakterizedir [ 97 ]. MS, bağışıklık sistemi hücrelerinin infiltrasyonu, mikroglia aktivasyonu ve ilerleyici demiyelinizasyon ile ilişkili bir nöron kaybı ve ardından nörolojik hasarı gösterir [ 98]]. Demiyelinizasyon, kendi kendine reaktif T helper 1 ve T helper 17 lenfositler gibi bağışıklık sistemi hücrelerinin ve kan-beyin bariyerinin (BBB) ​​yıkılmasının ardından diğer bağışıklık hücrelerinin sızmasına izin verir. Gerçekten de, lenfositler miyelin antijenini tanır, KBB'yi geçer, böylece miyelin kılıfının lezyonuna yol açan bir dizi inflamatuar olayı tetikler [ 99].]. Elektrik sinyallerinin iletiminde yer alan miyelin kılıfı, aksonların elektriksel izolasyonunu sağlar. Ayrıca üretimi, merkezi sinir sisteminde bulunan nöroglia hücreleri olan oligodendrositlerle ilgilidir. Oligodendrositler, miyelin üretmeden önce, subventriküler bölge gibi alanlarda embriyonik gelişim sırasında üretilen oligodendrosit progenitör hücrelerden başlayarak beyne ve omuriliğe göç etmek üzere farklı farklılaşma aşamalarından geçerler [ 100 ]. Olgunlaşma sırasında, oligodendrosit progenitör hücreleri, olgun oligodendrositlerin morfolojik özelliklerini üstlenmek için çoğalma ve göç etme kapasitelerini kaybeder [ 101].]. İnflamatuar durum ve bunun sonucunda miyelin kaybı, olgun oligodendrositlere farklılaşmak ve böylece yeni miyelin üretmek için oligodendrositlerin öncüllerinin alımını belirler [ 102 ]. Bununla birlikte, demiyelinizasyonu, CNS'de sinir uyarılarını yeniden oluşturmak için oligodendrositlerin aksonları yeniden remiyelinleştirdiği miyelin onarımı izleyebilir [ 103 ]. Ayrıca remiyelinizasyonun MS'nin erken bir evresinde meydana gelebileceği de gösterilmiştir [ 104 ]. Ayrıca, miyelin onarımına inflamasyon aracılık ettiği de gösterilmiştir; aslında lezyon, aksonlarda miyelin kılıfı oluşturmak için olgun oligodendrositlere farklılaşabilen oligodendrosit progenitör hücrelerin uyarılmasına ve işe alınmasına izin verir [ 105 , 106]. Hastalığın etyopatogenezine birçok faktör katkıda bulunsa da, hem nöroinflamasyon hem de oksidatif stres, hastalıkta meydana gelen zarar verici olaylarda doğrudan rol oynuyor gibi görünmektedir. Gerçekten de, hastalığın patogenezinin, kontrolsüz ROS ve RNS üretimi yoluyla oksidatif stresi içerebildiği ve bunun da inflamasyonun ilerlemesini desteklediği gösterilmiştir [ 107 , 108 , 109 ]. Ek olarak, oksidatif stres lipid, protein ve DNA oksidasyonu yoluyla doğrudan demiyelinizasyona ve nörodejenerasyona yol açabilir, fakat aynı zamanda dolaylı olarak, düzensiz bağışıklık tarafından tercih edilen bir proinflamatuar yanıtı indükleyebilir [ 110 , 111 ].]. Bu nedenle, antioksidan ve faz II detoksifikasyon genlerinin modülatörü olarak rolü olan Nrf2/ARE sinyal yolunun MS için yararlı bir terapötik hedef olabileceği gösterilmiştir [ 112 ]. Gerçekten de, Nrf2/ARE yolunun aktivasyonu, proinflamatuar mediatörlerin aktivasyonunun aracılık ettiği doku hasarına karşı koruma sağlayabilir. Özellikle deneysel otoimmün ensefalomiyelit (EAE) farelerinde Nrf2 KO'nun interferon-y (IFN-y) ve IL-17'nin artışıyla değerlendirilen nöroinflamasyonu desteklediği ve ayrıca hastalığı kötüleştirdiği gösterilmiştir [ 113 ]. Benzer şekilde, SFN gibi Nrf2 aktivatörleri, Nrf2/ARE yolunu pozitif olarak modüle edebilir, böylece nöroinflamasyonu korur [ 114].]. Bu nedenle, SFN, antioksidan yanıtı modüle ederek, MS'yi karakterize eden oksidatif stres ve nöroinflamasyon gibi zararlı olaylara karşı koymak için faydalı olabilir [ 115 ].

    5.1. Sülforafanın İn Vivo MS Modellerinde Etkileri
    Birkaç deneysel çalışma, MS'de di SFN'nin etkilerini göstermiştir. Li ve ark. miyelin oligodendrosit glikoprotein peptid 35-55 (250 μg) ile deri altından indüklenen dişi EAE C57Bl/6 farelerinde, SFN'nin anti-inflamatuar etkilerinin yanı sıra hastalığın gelişiminde ve ilerlemesinde SFN etkisinin altında yatan mekanizmaları gösterdi. Model indüksiyonu ile 48 saat sonra SFN (50 mg/kg) ile intraperitoneal tedavi, MS'nin gelişimini ve ilerlemesini engelledi. Gerçekten de, SFN, Nrf2/ARE yolunu yukarı regüle etti, HO-1 ve NQO-1'in ekspresyon seviyelerini arttırdı, bu da oksidatif stresin azalmasına yol açtı. Ek olarak, SFN, T hücreleri tarafından indüklenen iltihabı inhibe etti ve ayrıca anti-enflamatuar sitokin IL-10 seviyelerini de artırdı. Ayrıca, SFN, sıkı bağlantı proteinleri okludin ve claudin-5 seviyeleri ile gösterildiği gibi, BBB'nin bütünlüğünü korumuştur,116 ]. Ayrıca, Yoo ve ark. miyelin oligodendrosit glikoprotein peptit 35-55 ile indüklenen EAE C57Bl/6 farelerinde SFN'nin anti-inflamatuar etkilerini araştırdı. Modelin başlatılmasından önce intraperitoneal yoluyla SFN (50 mg/kg/gün) ile 14 gün boyunca ön tedavi, kontrol farelerine kıyasla davranışsal eksikliklerde bir iyileşmeye yol açtı. Ayrıca, SFN'nin omurilikte hem inflamatuar hücrelerin infiltrasyonunu hem de T hücrelerinin aracılık ettiği demiyelinizasyonu azalttığı gösterilmiştir. Ek olarak, SFN tedavisi, NO seviyelerinin azalmasıyla kanıtlandığı gibi oksidatif stresi azalttı. Bu nedenle SFN, MS gibi nöroinflamatuar hastalıkların önlenmesinde ve ilerlemesinde yararlı olabilir [ 117 ] (bkz.Tablo 5).

    Tablo 5
    Bu tablo, MS'nin in vivo modellerinde SFN'nin etkilerini gösterir. Burada kullanılan modeller, dozajlar, uygulama tipi ve sonuçlar rapor edilmiştir.
    EAE C57Bl/6 fareler SFN (50 mg/kg) intraperitoneal SFN, antioksidan etkisi sayesinde oksidatif stresi azalttı ve iltihabı inhibe etti [ 116 ]
    EAE C57Bl/6 fareler SFN (50 mg/kg/gün) intraperitoneal SFN, davranışsal eksiklikleri iyileştirdi, ayrıca oksidatif stres ve nöroinflamasyonun azalmasını destekledi. [ 117 ]
    EAE: deneysel otoimmün ensefalomiyelit; SFN: sülforafan; MS: multipl skleroz.

    5.2. Sülforafanın İn Vitro MS Modellerinde Etkileri
    Demiyelinizasyon, ROS ve TNF-α gibi sitotoksik aracıları serbest bırakan ve bunun sonucunda oligodendrosit kaybı ve aksonal hasarla sonuçlanan makrofajlar ve mikroglia gibi inflamatuar hücrelerin aktivasyonunu belirlediğinden, nöroinflamasyon ve nörodejenerasyonu önlemeye yönelik stratejiler gereklidir [ 118 , 119].]. Lim et al. SFN (5 µM), monometil fumarat (90 µM) ve bitkisel bir bileşik olan protandim'in (30 µg/mL) etkilerini, sıçanın primer glial kültürlerinden elde edilen kalıcı bir oligodendrosit hücre hattı olan OLN-93 hücrelerinde göstermiştir. Yazarlar, SFN, monometil fumarat ve protandimin, hidrojen peroksit tarafından indüklenen oksidatif stresin azalmasına yol açtığını ve HO-1, NQO-1 ve p62 seviyelerinin artmasıyla değerlendirildiğini gösterdi. Ayrıca, SFN ve protandim ile ön işlem, hidrojen peroksit tarafından indüklenen oligodendrosit hücre ölümünü önledi. Ek olarak, protandim, ROS seviyelerinin azaltılması yoluyla, oligodendrositlerin progenitör hücrelerinin farklılaşmasında daha etkili olduğunu göstermiş, böylece nöroprotektif etkilerini doğrulamıştır [ 120].]. Nrf2 aktivatörlerinin potansiyel anti-inflamatuar ve detoksifiye edici özelliklerini araştırmak için Wierinckx ve ark. lipopolisakkarit (100 ng/mL) ile indüklenen sıçanların astroglial ve mikroglial hücrelerinin birincil ortak kültürlerinde SFN (1, 5 veya 15 μM) ve dimetil fumaratın (5, 15 veya 30 μM) etkilerini göstermiştir. SFN veya dimetil fumarat ile tedavi, TNFa, IL-1p ve IL-6'nın üretimi ve salınımı ile değerlendirilen iltihabı azalttı. Ek olarak, SFN ve dimetil fumarat'ın da NQO-1 aktivitesini ve GSH seviyelerini arttırdığı gösterilmiştir. Sonuç olarak, hem SFN hem de dimetil fumarat, nöroinflamasyonu azalttı ve ayrıca lipopolisakkarit tarafından indüklenen astroglial ve mikroglial hücrelerin detoksifiye edici aktivitesini arttırdı [ 121 ] (bkz.Tablo 6).

    Tablo 6
    MS'in in vitro çalışmalarında SFN'nin etkilerini bildirdik. Ayrıca kullanılan modeller, dozajlar ve sonuçlar gösterildi.
    OLN-93 hücreleri SFN (5 µM) SFN, monometil fumarat ve Protandim ile tedavi, hidrojen peroksitin neden olduğu oksidatif stresi önledi [ 120 ]
    sıçanların astroglial ve mikroglial hücrelerinin birincil ortak kültürleri SFN (1, 5 veya 15 μM) SFN ve dimetil fumarat tek başına veya kombinasyon halinde iltihabı azalttı ve detoksifikasyon etkisini artırdı [ 121 ]
    SFN: sülforafan; MS: multipl skleroz.

    Git: 6. Sonuçlar
    Bu derlemenin amacı, AD, PD ve MS dahil olmak üzere ana nörodejeneratif hastalıklarda SFN'nin etkinliğini tanımlayan deneysel çalışmalara genel bir bakış sağlamaktır. Çalışmaların sonuçları, SFN'nin moleküler hedefi Nrf2 aracılığıyla antioksidan, anti-inflamatuar ve anti-apoptotik özelliklere sahip genleri ve molekülleri aktive ederek faydalı bir rol oynayabileceğini ileri sürdü. Bu nedenle, düşük nörotoksisitenin yanı sıra etkilerine bağlı olarak SFN, nörodejeneratif hastalıkların yönetimi için mevcut tedavilere destek olarak faydalı olabilir. Ayrıca, bazı mekanizmalar hala tam olarak bilinmemekle birlikte, Nrf2, AD, PD ve MS gibi nörodejeneratif hastalıkların ilerlemesine karşı koyabilecek yeni stratejiler geliştirmek için yararlı bir terapötik hedef olarak kabul edilebilir. Yine de,


    Brassica oleracea L. var'ın Biyoaktif Bileşikleri ve Biyoaktiviteleri . Italica Filizleri ve Mikro Yeşiller: Nutrasötik Bir Perspektiften Güncellenmiş Bir Genel Bakış

    Thanh Ninh Le , Chiu-Hsia Chiu ve Pao-Chuan Hsieh *
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
    Soyut
    Sebze ve otların yenilebilir fideleri olan filizler ve mikro yeşillikler, son yıllarda artan bir ilgi gördü ve sağlığı geliştirici değerli özellikleri nedeniyle fonksiyonel gıdalar veya süper gıdalar olarak kabul ediliyor. Özellikle brokoli fideleri ( Brassica oleracea L. var. Italica) glukosinolatlar, fenolik bileşikler, vitaminler ve temel mineraller dahil olmak üzere önemli miktarda biyoaktif bileşenleri için oldukça değerlidir. Bu ikincil metabolitler, potansiyel sağlık yararları ile pozitif olarak ilişkilidir. Çok sayıda in vitro ve in vivo çalışma, brokoli fidelerinin antioksidan, antikanser, antikanser, antimikrobiyal, antienflamatuar, anti-obezite ve antidiyabetik aktiviteler dahil olmak üzere çeşitli biyolojik özelliklere sahip olduğunu göstermiştir. Bu derleme, bu brokoli ürünlerinin biyoaktif bileşikleri ve biyoaktiviteleri hakkındaki güncellenmiş bilgileri özetlemekte ve ilgili etki mekanizmalarını tartışmaktadır. Bu inceleme, tüketicilerin gıda seçimleri ve fonksiyonel gıda ve nutrasötik endüstrilerindeki uygulamalar için potansiyel bir referans görevi görecektir.

    Anahtar kelimeler: filizler, mikro yeşillikler, fideler, brokoli, biyoaktif bileşikler, biyolojik aktiviteler
    1. Giriş
    Son yirmi yılda, hızlı nüfus artışı ve çevresel bozulma nedeniyle insan beslenmesinin tarımsal üretimin sürdürülebilirliğine olan yoğun bağımlılığı vurgulanmıştır [ 1 ]. Artan gıda ve tarımsal üretkenlik, aynı anda aşırı su kullanımı, toprak işgali, gübreler, pestisitler, herbisitler ve gıda atıklarının işlenmesi yoluyla finansal kaynak, ekolojik sistem ve insan sağlığı üzerinde dışsal harcamalar ve sonuçlar doğurmuştur [ 2 ]. Bu nedenle, Birleşmiş Milletler'in sürdürülebilir kalkınma hedeflerine ulaşmak için tarım ve gıda sektörleri büyük bir zorlukla karşı karşıya kaldı: çevre üzerindeki olumsuz etkileri en aza indirirken küresel gıda talebi için yeterli beslenmeyi sağlamak [ 3]. Ayrıca, son yıllarda, sağlıklı yaşam tarzı çerçevesi hakkında halkın farkındalığının artması, temel besinler açısından zengin ve insan sağlığı üzerinde olumlu etkileri olan yeni gıda kaynaklarının araştırılmasına yol açmıştır [ 4 ]. Sonuç olarak, fonksiyonel gıdalar ve nutrasötikler, bu gıdalar hem kronik hastalık riskini azaltmak için sağlık yararları hem de temel beslenmeyi sağlayabileceğinden önemli ölçüde ilgi görmektedir [ 5 , 6 ]. Ayrıca, birçok bilimsel proje ve araştırma grubu, gıda atıklarının geri kazanılmasına ve bunları yeni ürün geliştirmede fonksiyonel bileşenler olarak hizmet etmek üzere yüksek değerli yan ürünlere dönüştürmeye odaklanmaktadır [ 7 , 8 , 9 , 10 ]]. Özellikle gıda güvenliği, gıda güvenliği ve gıda sürdürülebilirliği gibi gıda sistemlerinin sorunları, koronavirüs (COVID-19) pandemi krizi döneminde önemli ölçüde ele alınmalıdır. Tüketicilerin daha sağlıklı diyetler uygulayarak bağışıklık sistemlerini koruma talepleri arttıkça, gıdaların ve fonksiyonel gıdaların biyoaktif bileşenlerinin mevcudiyeti zorunlu hale gelebilir. Gıda endüstrisi, sağlığı destekleyen ve tüketicilerin bağışıklık sistemini destekleyen biyoaktif bileşiklerle güçlendirilmiş fonksiyonel gıdalar sunmak için COVID-19 pandemi krizi çağında yeterince hızlı yeniliklere sahip olmalıdır [ 11].]. Bu nedenle, gıda kaynaklarından ekstraksiyon, ayırma, izolasyon, tanımlama ve kantifikasyonu içeren fonksiyonel bileşiklerin üretimi için ortaya çıkan teknolojiler önemli ölçüde araştırılmış ve geliştirilmiştir [ 12 , 13 ]. Filizler ve mikro yeşillikler, herbisit ve pestisit kullanımının ortadan kaldırılması, gıda atığı oluşumunun azaltılması ve ticari ürünlere kıyasla sağlığı teşvik eden fitokimyasalların 10 kat artırılması dahil, sürdürülebilirlik perspektifinden çeşitli avantajlara sahip fonksiyonel gıdalar için yeni bir yaklaşımdır. yetişkin bitkiler [ 2 , 14 ].

    Filizler, mikro yeşillikler ve bebek yeşillikleri dahil olmak üzere çeşitli sebze ve ot fideleri, üretim teknikleri ve besin değerleri nedeniyle popüler hale gelmektedir [ 15 ]. Her iki ürün de olgunlaşmamış bir aşamada tüketilse de, filizler mikro yeşilliklerden farklıdır [ 16 ]. Filizler, 2-7 gün arasında büyüyen çimlenmiş tohumlardan elde edilen ve kotiledonlar henüz gelişmemişken ve gerçek yapraklar henüz ortaya çıkmamışken hasat edilen sürgün ve kökçüklerdir. Filizlerden farklı olarak, mikro yeşillikler tipik olarak kotiledon yapraklarının tam genişlemesi ve genellikle ekimden 7-21 gün sonra ortaya çıkan ilk gerçek yaprakların ortaya çıkması ile tanınır [ 16].]. Filizler ve mikro yeşillikler, herbisitler, pestisitler veya ağır metaller gibi dış kirleticilerin varlığını ortadan kaldıran güvenlik özelliklerinin önemli ölçüde iyileştirilmesiyle iç mekan üretimi için idealdir [ 17 ]. Ek olarak, fidecilik mevsimsel, iklimsel ve coğrafi değişikliklerin istenmeyen etkileri olmaksızın esnek ve nitelikli bir süreçtir [ 17 ].

    Küçük olmalarına rağmen, filizler ve mikro yeşillikler, şaşırtıcı derecede yoğun tatlar, canlı renkler ve zengin bitki besin içeriği sağlayan özel mahsullerin yeni sınıfıdır. Normal besin değerine ek olarak, fideler, önemli ölçüde sağlığı geliştirici özelliklere sahip fonksiyonel gıdalar olarak kabul edilir [ 16 ]. Filizi ve microgreens gibi aynı tip [ait olgun karşıtları daha fenolikler, flavonoidler, pigmentler, vitaminler ve mineraller gibi işlevsel bileşenleri daha yüksek seviyede içerdiğini, son raporlar 15 , 18]. Ayrıca, bu ikincil metabolitler, bağışıklık sistemini güçlendirmek ve kardiyovasküler hastalıklar, obezite, diabetes mellitus ve kanserler gibi çeşitli hastalıkların gelişme riskini azaltmak için potansiyel sağlık yararları ile pozitif olarak ilişkilidir [ 18 ]. Filizler ve mikro yeşillikler, farklı sebzelerin, otların, tahılların ve hatta bazı yabani türlerin tohumlarından üretilir. Aday genotipler, en çok kullanılan türlerin Cruciferae, Cucurbitaceae, Asteraceae, Chenopodiaceae, Lamiaceae ve Apiaceae familyalarından olduğu tat ve sağlık standartlarına göre genişlemektedir [ 17 ].

    Genel olarak buruk bir tada sahip bitkilerden (genellikle Cruciferae olarak bilinir) ve özellikle brokoliden ( Brassica oleracea L. var. Italica ) oluşan Brassicaceae familyası, filiz ve mikro yeşillik üretimi için büyük ilgi görmüştür [ 19 ] . Brokoli fideleri (Şekil 1), nitrojen-kükürt türevleri (glukozinolatlar ve izotiyosiyanatlar), polifenoller (klorojenik ve sinapik asit türevleri ve flavonoidler), mineraller (selenyum, potasyum ve manganez) ve vitaminler (A, C) dahil olmak üzere sağlığı geliştirici fitokimyasalların mükemmel bir kaynağıdır. , K ve B6), çiçek salkımlarından çok daha yüksek konsantrasyonlarda [ 14 , 20 , 21 , 22 , 23]. Mevcut veriler, brokoli filizi ve mikro yeşilliklerin bir diyet porsiyonunda tüketiminin insan sağlığında önemli bir rol oynadığını ve kronik hastalık riskini azalttığını ortaya koydu. Çok sayıda in vitro ve in vivo çalışma, brokoli filizlerinin ve mikro yeşilliklerin kimyasal bileşimini ve antioksidan, antikanserojenik, antimikrobiyal, antienflamatuar ve antidiyabetik aktiviteler içeren çoklu biyolojik kapasitelerini göstermiştir [ 24 , 25 , 26 , 27 ]. Özellikle antikanser ve antioksidan özellikleri son yıllarda kapsamlı bir şekilde incelenmiştir. Ayrıca, insan temelli araştırmalar, brokoli fidelerinin çeşitli kanser türleri ve diğer hastalıklar için koruyucu bir ajan olma potansiyeli hakkında umut verici sonuçlar sunmuştur.Ayrı bir pencerede aç


    ( A ) Brokoli tohumları. ( B ) Beş günlük brokoli filizi.

    Bugüne kadar brokolinin genel sağlık yararlarına ve ilgili bileşiklerine odaklanan birkaç inceleme yayınlandı [ 31 , 32 , 33]. Bununla birlikte, bu raporlar sadece brokoli çiçeklerine odaklanırken, brokoli filizlerinin ve mikro yeşilliklerin biyolojik olarak işlevsel özellikleri hakkında ayrıntılı incelemeler mevcut değildir. Bu nedenle, bu derleme, ilk kez, brokoli filizleri ve mikro yeşilliklere ayrıntılı bir genel bakış ve bunların biyoaktif bileşikleri ve biyoaktiviteleri hakkında nutrasötik bir bakış açısıyla, ilgili etki mekanizmaları hakkında tartışmalarla birlikte derinlemesine bir fikir sağlamayı amaçladı. Bu çalışma, güncel makalelere ulaşmak için Web of Science, Scopus, PubMed ve Google Scholar'ın yüksek kaliteli veri tabanına başvurularak gerçekleştirilmiştir. Bu arama motorları tek başına ve kombinasyon halinde aşağıdaki anahtar kelimeler için kullanıldı: “ Brassica oleracea L. var. italik”, “brokoli”, “filizler”, “mikro yeşillikler”, “biyoaktif bileşikler”, “biyolojik aktiviteler”, “antioksidan”, “antikanser”, “antimikrobiyal”, “sağlık yararları” vb. Bu çalışmada, brokoli filizleri ve mikro yeşillikler hakkında 2006'dan 2020'ye kadar yayınlanan doksanın üzerinde çalışma gözden geçirilmiştir.

    Git: 2. Biyoaktif Bileşikler
    Biyoaktif bileşikler, metabolik süreçleri modüle edebilen ve sağlığı geliştirici faydalar sağlayabilen, başlıca meyveler, sebzeler ve tahıllar olmak üzere gıdalarda bulunan ekstra besin bileşenleridir [ 34 ]. Brokoli fidelerinin düzenli tüketimi, olgun çiçeklerinkinden birkaç kat daha yüksek biyoaktif bileşik konsantrasyonları sayesinde doğal savunma sistemlerini uyarabilir ve kronik hastalık riskini azaltabilir [ 21 ]. Bu nedenle, yeni bir bitki kaynaklı fonksiyonel gıda olarak kabul edilirler. Önceki çalışmalar, brokoli filizlerinin ve mikro yeşilliklerin oldukça yüksek miktarda glukozinolatlar, fenolik bileşikler ve temel besin maddeleri içerdiğini kapsamlı bir şekilde göstermiştir.şekil 2ve Tablo 1-3). Bitkilerden, sebzelerden ve meyvelerden biyoaktif bileşiklerin ekstraksiyonu için kullanılan, basınçlı sıcak su ekstraksiyonu, mikrodalga destekli ekstraksiyon veya darbeli elektrik ekstraksiyonu gibi gelişen teknolojiler dahil olmak üzere çok sayıda yöntem vardır [ 35 , 36 , 37 ]. Özellikle brokoli fidelerinin ve genel olarak Brassica cinsinin bu bileşiklerinin ayrılması, tanımlanması ve karakterizasyonu hem geleneksel hem de geleneksel olmayan teknolojiler tarafından araştırılmıştır [ 38 , 39 ].]. Bu teknolojiler arasında, brokoli örnekleri esas olarak diyot dizisine (DAD), ultraviyole görünür (UV-vis), elektrosprey iyonizasyon (ESI) veya kütle spektrometrisi (MS) ile birleştirilmiş yüksek performanslı sıvı kromatografisi (HPLC) ile gerçekleştirilmiştir. Cı- 18analitik sütunlar. Glukosinolatların hidroliz ürünleri olan izotiyosiyanatları karakterize etmek için kütle spektrometrisi (GC-MS) ile birleştirilmiş gaz kromatografisi de uygulandı. Ayrıca, spesifik bir bileşiğin belirlenmesi gerekmiyorsa, en basit prosedür olarak toplam fenolik ve flavonoid içeriğini belirlemek için araştırmaların çoğunda spektrofotometrik (UV-vis) saptama kullanılmıştır (Tablo 1-3). Brokoli filizlerinde ve mikro yeşilliklerde araştırılan başlıca fitokimyasalların glukosinolatlar ve ilgili bileşikler olduğu özetlenebilir, ancak fenolik bileşikler de birçok çalışmada analiz edilmiştir.şekil 2).


    Glukozinolatlar (GLS'ler), nitrojen-kükürt bileşikleri (β - D -tioglukozit-n-hidroksisülfatlar), önemli bitki sekonder metabolitleridir ve neredeyse sadece Brassica cinsinde bulunur ve lahana, lahana ve brokoliye özgüdür [ 40 ]. GLS'ler alifatik (metiyonin, izolösin, lösin veya valinden türetilmiştir), aromatik (fenilalanin veya tirozinden türetilmiştir) veya indol (triptofandan türetilmiştir) olarak sınıflandırılır. Alifatik grup, B. oleraceae , B. napus , B. rapa ve R. sativus'un hemen hemen tüm turpgillerden tohum ve fidelerindeki ana GLS grubudur [ 19 ]. Brokoli filizlerinde ve mikro yeşilliklerde 26 GLS bileşiği tanımlanmıştır (tablo 1). Bu bileşikler arasında en bol bulunan GLS'ler glukorafanın, glukoiberin, glukoerusin, glukobrasisin ve neoglukobrasisindir [ 41 ]. Özellikle, glukofanin, 100 g taze ağırlık (FW) başına 605 ila 1172 mg aralığında nicelendirilen toplam GLS içeriğinin %50'sinden fazlasını oluşturuyordu [ 42 , 43 , 44 ]. tablo 1


    Brokoli filizlerinde ve mikro yeşilliklerde glukozinolatların analizi.
    Alifatik Glukozinolatlar
    1 Sinigrin C 10 H 17 NO 9 S 2 4-12 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS
    2 glukonapin C 11 H 19 NO 9 S 2 3-12 gün HPLC-UV, HPLC-DAD-MS
    3 progoitrin C 11 H 19 NO 10 S 2 3-12 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    4 glukokoklearin C 11 H 21 NO 9 S 2 NS HPLC-ESI-MS
    5 glukokonringianin C 11 H 21 NO 9 S 2 NS HPLC-ESI-MS
    6 glukoiberverin C 11 H 21 NO 9 S 3 4-12 gün HPLC-DAD
    7 glukozativin C 11 H 21 NO 9 S 3 NS HPLC-ESI-MS
    8 glukoiberin C 11 H 21 NO 10 S 3 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS
    9 glukorafenin C 12 H 21 NO 10 S 3 8 gün HPLC-DAD
    10 glukojiaputin C 12 H 23 NO 9 S 2 NS HPLC-ESI-MS
    11 3-Metilbütil-GLS C 12 H 23 NO 9 S 2 NS HPLC-ESI-MS
    12 3-Metilpentil-GLS C 13 H 25 NO 9 S 2 NS HPLC-ESI-MS
    13 4-Metilpentil-GLS C 13 H 25 NO 9 S 2 NS HPLC-ESI-MS
    14 glukoerusin C 12 H 23 NO 9 S 3 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS, UHPLC-MS/MS
    15 glukorafanin C 12 H 23 NO 10 S 3 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS, UHPLC-MS/MS
    16 n -Pentil-GLS C 13 H 25 NO 9 S 3 4-12 gün HPLC-DAD
    17 glukoalissin C 13 H 25 NO 10 S 3 3-12 gün HPLC-DAD, HPLC-MS/MS, HPLC-ESI-MS
    18 glukohirsutin C 16 H 31 NO 10 S 3 12 gün HPLC-UV
    19 Diglukotiobeinin C 17 H 31 NO 14 S 4 NS HPLC-ESI-MS
    Aromatik glukozinolatlar
    20 glukozinalbin C 14 H 19 NO 10 S 2 4-12 gün HPLC-DAD
    21 glukonasturtin C 15 H 21 NO 9 S 2 4-12 gün HPLC-DAD
    indolik glukozinolatlar
    22 n -Heksil-GLS C 13 H 25 NO 9 S 2 4-12 gün HPLC-DAD
    23 glukobrasisin C 16 H 20 N 2 O 9 S 2 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS
    24 4-Hidroksi-GLB C 16 H 20 N 2 O 10 S 2 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS
    25 4-Metoksi-GLB C 17 H 22 N 2 O 10 S 2 3-12 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS
    26 neoglukobrasisin C 17 H 22 N 2 O 10 S 2 3-14 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS, HPLC-MS/MS
    Toplam glukozinolatlar 3-12 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, GOD/PAP kiti
    Numara yok; Referans, referans; NS, belirtilmemiş; GLS, glukozinolat; GLB, glukobrasisin; HPLC-UV, ultraviyole dedektörlü yüksek performanslı sıvı kromatografisi; HPLC-DAD, diyot dizisi dedektörlü HPLC; HPLC-DAD-MS, kütle spektrometrisine bağlı HPLC-DAD; HPLC-MS/MS, tandem MS'e bağlı HPLC; UHPLC-MS/MS, MS/MS ile birleştirilmiş ultra-HPLC; HPLC-ESI-MS, elektrosprey iyonizasyon MS ile birleştirilmiş HPLC.

    Özellikle, GLS'ler turpgillerden sebzelerde fonksiyonel bileşenler değildir, hidroliz ürünleri varsayılan biyoaktif bileşiklerdir [ ]. Bitki dokuları mekanik olarak hasar gördüğünde, GLS'ler, enzim mirosinaz tarafından izotiyosiyanatlar (ITC'ler), tiyosiyanatlar, nitriller, epitionitriller ve oksazolidinler dahil olmak üzere çeşitli bozunma ürünlerine hidrolize edilebilir. Özellikle, ITC'lerin güçlü antikarsinojenik aktiviteler sunduğu kanıtlanmıştır [ ]. Yukarıda bahsedildiği gibi, brokoli fidelerindeki baskın GLS'ler sırasıyla enzimatik olarak sülforafan (SFN), erusin (ERN) ve iberin'e dönüştürülen glukorafanın, glukoerusin ve glukobrasisindir . SFN, kansere neden olan kimyasalları detoksifiye etmek için insan ve hayvan vücutlarında faz II enzimlerinin doğal olarak oluşan bir indükleyicisidir. Böylece farklı kanserlerin, özellikle de mesane, kolon ve akciğer kanserlerinin riskini azaltabilir [ ]. Bugüne kadar, SFN, brokoli filizlerinden ve mikro yeşilliklerden tanımlanan toplam 17 ITC arasında ana bileşik olarak analiz edildi.. Brokoli fidelerinin toplam ITC içeriğinin 100 g FW başına yaklaşık 11 mg olduğu bildirildi. Ek olarak, bu tür fidelerin %90 SFN içerdiği söylenmiştir [ .

    Tablo 2


    Brokoli filizlerinde ve mikro yeşilliklerde izotiyosiyanatların analizi.
    1 butironitril Cı- 4 , H 7 K 3-7 gün GC–MS
    2 alil izotiyosiyanat C 4 H 5 NS 4 gün GC–MS
    3 2-Metil-2-nitropropan Cı- 4 , H 9 NO 2 3-7 gün GC–MS
    4 4-(Metiltio)-bütannitril C 5 H 9 NS 5 gün GC–MS
    5 butil izotiyosiyanat C 5 H 9 NS 4-9 gün GC–MS
    6 izobütil izotiyosiyanat C 5 H 9 NS 4 gün GC–MS
    7 İberin C 5 H 9 NOS 2 4-8 gün HPLC-DAD, UHPLC-MS/MS, GC–MS
    8 4-İzotiyosiyanato-1-büten C 6 H 9 NS 2 4-9 gün GC–MS
    9 3-Metilbütil izotiyosiyanat C 6 H 11 NS 4 gün GC–MS
    10 izoamil metil sülfoksit C 6 H 14 İşletim Sistemi 3-7 gün GC–MS
    11 Eruçin C 6 H 11 NS 2 3-9 gün UHPLC-MS/MS, GC–MS
    12 sülforafen C 6 H 9 NOS 2 8 gün UHPLC-MS/MS
    13 sülforafan C 6 H 11 NOS 2 2-12 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS, HPLC-MS/MS, UHPLC-MS/MS, GC–MS, GC−FID
    14 İndol-3-karbinol C 9 H 9 HAYIR 8 gün UHPLC-MS/MS
    15 İndol-3-karboksilik asit Cı- 9 H 7 NO 2 NS HPLC-DAD-MS
    16 İndol-3-asetik asit C 10 H 9 HAYIR 2 NS HPLC-DAD-MS
    17 1-Metoksiindol-3-karbaldehit C 10 H 9 HAYIR 2 NS HPLC-DAD-MS
    Toplam izotiyosiyanatlar 8 gün UV/Vis, UHPLC-MS
    UV/Vis, ultraviyole-görünür spektrofotometri; GC–MS, kütle spektrometrisi ile birleştirilmiş gaz kromatografisi; GC-FID, alev iyonizasyon dedektörlü GC.

    2.2. Fenolik Bileşikler
    GLS'ler ve ITC'lerin yanı sıra, turpgillerden sebzelerde bulunan bir diğer önemli biyoaktif bileşen grubu fenolik bileşiklerdir. Bunlar bitkilerde fenilpropanoid ve şikimat yolları yoluyla üretilen ikincil metabolitlerdir ]. Fenolik bileşikler, bağlı hidroksil sübstitüentleri ile bir veya daha fazla aromatik halka içeren yapılarına göre fenolik asitler, flavonoidler, tanenler, kumarinler, lignanlar, kinonlar, stilbenler ve kurkuminoidler gibi çeşitli alt gruplara ayrılabilir. Bu bileşikler esas olarak antioksidan aktivite için rapor edilmiştir. Ayrıca, antikanserojenik, antimikrobiyal, antienflamatuar ve yaşlanmayı önleyici özellikler gibi diğer sağlığı geliştirici etkilerle de ilişkilidirler [ 75].]. Hidroksisinnamik asitler ve flavonoid glikozitler, brokoli fidelerinde bulunan başlıca fenolik bileşikler arasındadır [ ]. Kantitatif ve kalitatif analiz kullanılarak, 29 hidroksisinnamik asit ve türevi ve 8 flavonoid ve türev dahil olmak üzere brokoli filizleri ve mikro yeşilliklerde 37 fenolik bileşik karakterize edildi. Fenolik profilleri çoğunlukla sinapik asit, gallik asit, flavonoidler (kersetin ve kaempferol) ve diğer hidroksisinamik asitlerden (klorojenik, kafeik asit ve ferulik asitler) oluşur (). Genel olarak, toplam fenolik ve flavonoid içeriğinin sırasıyla 100 g FW başına 74-453 mg ve 100 g FW başına 95-105 mg aralığında olduğu belirlendi [].

    Tablo 3
    Fenolik asitler ve türevleri
    1 Benzoik asit Cı 7 H 6 O 2 6 gün HPLC-UV
    2 Salisilik asit Cı 7 H 6 O 3 6 gün HPLC-UV
    3 p -Hidroksibenzoik asit Cı 7 H 6 O 3 7-8 gün HPLC-DAD, HPLC-ESI-MS
    4 protokateşik asit Cı 7 H 6 O 4 5 gün HPLC-UV, HPLC-DAD-MS
    5 gentisik asit Cı 7 H 6 O 4 4 gün HPLC-UV [
    6 gallik asit Cı 7 H 6 O 5 5-8 gün HPLC-UV, HPLC-DAD-MS, HPLC-ESI-MS
    7 vanilik asit Cı- 8 , H 8 O 5 gün HPLC-UV
    8 p -kumarik asit Cı- 9 H 8 O 3 4-7 gün HPLC-DAD, HPLC-UV
    9 eskületin Cı 9 H 6 O 4 5 gün HPLC-UV
    10 kafeik asit Cı- 9 H 8 O 4 4-7 gün HPLC-UV, HPLC-DAD, HPLC-DAD-MS
    12 sinapik asit Cı- 11 , H 12 O 5 3-12 gün HPLC-UV, HPLC-DAD-MS, HPLC-ESI-MS
    13 gallik asit heksosit Cı- 13 , H 16 O 10 7-8 gün HPLC-DAD, HPLC-ESI-MS
    14 Gallik asit 4- O -glukozit Cı- 13 , H 16 O 10 7-8 gün HPLC-DAD, HPLC-ESI-MS
    15 Sinapoil malat C 15 H 16 O 9 7-8 gün HPLC-DAD, HPLC-ESI-MS
    16 izoklorojenik asit C 16 H 18 O 9 4 gün HPLC-UV
    17 Klorojenik asit C 16 H 18 O 9 3-12 gün HPLC-DAD, HPLC-UV
    18 kafeoil-kinik asit C 16 H 18 O 9 3-8 gün HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    19 1- O -sinapoil-β- D -glikoz C 17 H 22 O 10 7-8 gün HPLC-DAD, HPLC-ESI-MS
    20 5- O- Sinapoilkinik asit C 18 H 22 O 10 7-8 gün HPLC-DAD, HPLC-ESI-MS
    21 Digalloil heksozit Cı- 20 , H 20 O 14 7-8 gün HPLC-DAD, HPLC-ESI-MS
    22 1,2-Diferuloylgentiobiose C 32 H 38 O 19 7-8 gün HPLC-DAD, HPLC-ESI-MS
    23 2-Feruloyl-1-sinapoylgentiobiose C 33 H 40 O 18 7-8 gün HPLC-DAD, HPLC-ESI-MS
    24 1,2-Disinapoylgentiobiose C 34 H 42 O 19 7-8 gün HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    25 1-Sinapoyl-2,2'-diferuloylgentiobiose C 43 H 46 O 24 7-8 gün HPLC-DAD, HPLC-ESI-MS
    26 2-Feruloyl-1,2'-disinapoylgentiobiose C 44 H 50 O 22 7-8 gün HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    27 1,2-Disinapoyl-1'-ferulolylgentiobiose C 44 H 50 O 23 7-8 gün HPLC-DAD, HPLC-ESI-MS
    28 1, 2'-Trisinapoylgentiobiose C 45 H 52 O 23 7-8 gün HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    29 Gallotanik asit C 76 H 52 O 46 7-8 gün HPLC-DAD, HPLC-ESI-MS
    Flavonoidler ve türevleri
    30 Apigenin C 15 H 10 O 5 5 gün HPLC-UV
    31 kaempferol C 15 H 10 O 6 5-12 gün HPLC-UV, HPLC-DAD-MS, HPLC-ESI-MS
    32 Luteolin C 15 H 10 O 6 5 gün HPLC-UV
    33 kuersetin C 15 H 10 O 7 5-12 gün HPLC-UV, HPLC-DAD, HPLC-ESI-MS
    34 mirisetin C 15 H 10 O 8 5 gün HPLC-UV
    35 astragalin Cı- 21 , H 20 O 11 7-8 gün HPLC-DAD, HPLC-ESI-MS
    36 Rutin C 27 H 30 O 16 NS HPLC-DAD-MS
    37 Robinin C 33 H 40 O 19 4 gün HPLC-UV
    Toplam fenolik bileşikler 3-14 gün UV/Vis, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    Toplam flavonoid bileşikleri 3-14 gün UV/Vis, HPLC-DAD, HPLC-DAD-MS, HPLC-ESI-MS
    Brokoli filizlerinde ve mikro yeşilliklerde fenolik bileşiklerin analizi.


    2.3. Diğer Bileşikler
    Diğer filizlenmiş tohumlara benzer şekilde, brokoli filizleri ve mikro yeşillikler, yüksek konsantrasyondaki temel besin bileşimiyle bilinir []. Temel besinler, vitaminler, mineraller, yağ asitleri ve amino asitler gibi gıdalardan sağlanması gereken bileşiklerdir. Bunlar, DNA sentezi, enerji üretimi ve biyo sentetik yolların [dahil olmak üzere normal vücut fonksiyonları için gereklidir 84]. Bununla birlikte, brokoli fidelerinin besin kompozisyonunu ve çimlenme sırasında meydana gelen varyasyonları belirleyen çalışmaların sayısı, glukozinolatlar ve fenolik bileşiklerinkinden önemli ölçüde azdır. Bu çalışmalar brokoli filizlerinin vitaminler (A, C, K ve folik asit), mineraller (potasyum, kalsiyum, magnezyum ve selenyum), pigmentler (karotenoidler ve klorofiller) ve diğer bazı önemli besinler (amino asitler, yağ asitleri ve diyet lifi). Genel olarak, brokoli filizlerinin ve mikro yeşilliklerin biyokimyasal bileşimi esas olarak çimlenme süresine bağlıdır ve 8 günlük filizler en yüksek besin konsantrasyonu sergilemiştir [ ].

    Bu bileşikler arasında karotenoidler ve klorofiller, brokoli filizleriyle ilgili çeşitli çalışmalarda belirlenmiştir [ ]. Karotenoidler, brokoli dahil tüm fotosentetik bitkiler tarafından ikincil metabolitler olarak sentezlenen bir izoprenoid molekül grubudur []. Reaktif oksijen türlerini inhibe edebilen ve oksidatif hasarı azaltabilen uzun polien zincirinin konjuge çift bağları sayesinde lipofilik antioksidan ve immünomodülatör aktivitelere sahiptirler [ 21 ]. Böylece karotenoidler kardiyovasküler hastalıklar, cilt hasarı, diyabet ve çeşitli kanser türleri gibi dejeneratif hastalıkları önleyebilir [ ]. Brokolide bulunan başlıca karotenoidler β-karoten, α-ksantofil (lutein) ve β-ksantofillerdir (zeaksantin, violaksantin ve neoksantin) []. Özellikle β-karoten, tıp bilimindeki önemi nedeniyle brokoli filizlerinde ve mikro yeşilliklerde en tipik olarak çalışılan karotenoidlerdir [ ]. İnsan diyetine organogenez, doku farklılaşması, bağışıklık fonksiyonu ve görme için gerekli olan önemli miktarda A vitamini sağlar [ ]. Brokoli filizlerinin toplam karotenoid (β-karoten) konsantrasyonu, çeşitli çalışmalarda 100 g kuru ağırlık (DW) başına 118 ila 221 mg aralığında bildirilmiştir [ ]. Klorofiller, brokoli filizi özünde düzenli olarak bulunan bir başka ışık emici pigment grubudur. Porfirin yapısına sahip birincil metabolitlerdir []. Karotenoidlere benzer şekilde, ayrıca antioksidan, anti-mutajenik ve anti-inflamatuar potansiyele sahiptirler [ ]. Brokoli filizlerindeki klorofil içeriği, önceki çalışmalarda, 100 g DW başına 738 ila 850 mg arasında değişen toplam karotenoid içeriği ile birlikte genel olarak belirlendi [ ]. Ek olarak, bir çalışma brokoli filizlerinde karotenoidlerin (lutein ve neoksantin) ve klorofilin (klorofil a ve b ) bireysel konsantrasyonlarını göstermiştir [ ].

    2.4. Biyoaktif Bileşiklerin Biyoyararlanımı
    Gıdaların veya nutrasötiklerin insan tüketimi, biyoaktif bileşiklerle sınırlı değildir. İnsan vücudunda biyoyararlanım, uygulanan dozun dolaşım sistemine ulaşan ve daha sonra hedef dokulara dağılan fraksiyonu olarak belirlenir, böylece biyoaktif bileşikler, sağlığı geliştirici faydalar uygulamak için biyolojik olarak kullanılabilir []. Bitki hücre duvarı kompozisyonları, kimyasal yapılar, işleme koşulları, çevresel stres ve ayrıca bireyin gastrointestinal sistemi dahil olmak üzere diyet fitokimyasallarının biyoyararlanımını birçok faktör etkileyebilir [ ].

    Yüksek miktarda brokoli filizi tüketiminin kanser riskini azaltmadaki etkinliği, esas olarak yüksek GLS içeriğine bağlanmıştır. Turpgillerden sebzelerde, özellikle brokolide bileşenlerinin yüksek değişkenliği nedeniyle günlük GLS alımını tahmin etmek zordur. Avrupalılar için 4.7-65 mg/gün arasında değişen bir glukozinolat alımı raporu belirtilmiştir [ ]. GLS'ler, hem ince bağırsaktaki bitki enzimi mirosinaz hem de gastrointestinal sistemdeki mikrobiyota tarafından, belirgin antikanser etkisine sahip olduğu bildirilen ITC'lere parçalanır [ 89 ]. 2-3 saat sonra, ITC'ler ince bağırsak ve kolondan emilir ve merkapturik asit yolu ile metabolize edilir. Metabolitler insan idrarında ve kanında saptanabilir [ ]. Brokoli filizlerinde, en bol bulunan GLS'lerden ikisi glukorafanın ve glukoerusindir ve bu GLS'lerin mirosinaz hidrolizi sırasıyla SFN ve ERN'yi oluşturur. Brokoli filizlerinde seçkin ITC'ler olan SFN, faz 2 detoksifikasyon enzimlerinin en güçlü doğal indükleyicilerinden biridir, antioksidan durumunu arttırır ve hayvanları kimyasal olarak indüklenen kansere karşı korur [ ]. Etki modları, baskılayıcı protein Kelch benzeri ECH ile ilişkili protein 1 (Keap1), nükleer faktör eritroid 2 p45 ile ilişkili faktör 2 (Nrf2) ve bir antioksidan duyarlı element (ARE) içeren genlerle ilgilidir [ .]. Bu nedenle, potansiyel kanser kemopreventif ajanların süt ürünlerine dahil edilmesi önemlidir. Ayrıca, bir insan patojeni olan Helicobacter pylori'den kaynaklanan üreaz için inhibitör bir etki göstermiştir [ ]. GLS'lerden bağırsak mikrobiyotası tarafından diğer parçalanma ürünlerinin oluşumu iyi belgelenmemiştir. Örneğin , insan bağırsak mikrobiyotasına ait Bifidobacterium suşları, in vitro olarak GLS'leri nitrillere metabolize edebilir. Birkaç mikroorganizmanın nitrilleri amonyak ve organik asitlere dönüştürebildiği de bilinmektedir [ ].

    Fenolik bileşikler, insan beslenmesinde önemli mikro besinlerdir ve polifenollerin sağlık yararları, tüketilen miktara ve biyoyararlanımlarına bağlıdır [ ]. Fenolik bileşiklerin diyetle alınması, antioksidan, yaşlanmayı geciktirici, çoğalma önleyici ve iltihap önleyici faaliyetler gibi sağlığı geliştirici etkilerle ilişkilendirilmiştir [ ]. İnsanlar için fenolik bileşiklerin ortalama gıda alımı hidroksisinnamik asit% 50, flavonoidlerin% 20-25, ve antosiyanin% 1 [dahil olmak üzere, 780-1058 mg / gün olduğu bildirilmiştir ]. Biyoyararlanım fenolik bileşikler arasında önemli ölçüde farklılık gösterir, bu nedenle insan diyetinde en bol bulunan bileşikler, hedef dokularda aktif metabolitlerin en yüksek konsantrasyonlarına yol açanlar olmak zorunda değildir [ ]. Diyet fenoliklerinin sindirimi için, gastrointestinal sistem boyunca sindirimi ve enterositlerin içindeki sindirimi içeren iki yön vardır. Bu sindirimler, bağırsak lümeni, fırça sınırı ve enterositte bulunan hidrolaz enzimlerine dayanır [ ]. Birçok çalışma, polifenoller, ince bağırsakta ve mikrobiyal sindirim sonrası bağırsak enzimleri kalın bağırsak [hem de absorbe edildiğini göstermiştir . İnsan ince bağırsağında ve midesinde, gallik asit ve kafeik asit en iyi emilen bileşiklerdir (%95), ardından kateşinler (%20). En az emilen polifenoller proantosiyanidinler ve antosiyaninlerdir. Midede parçalanabilen ve kolayca emilebilen pH'a duyarlıdırlar. Flavonoid grubu, moleküler ağırlıkları > 500 Da olan grup moleküllerinden biridir, bu nedenle düşük bir biyoyararlanım düzeyine (%1) sahiptir, çünkü moleküllerin pasif difüzyon yollarıyla taşınması olanaksızdır [ ]. Karotenoidlerin, özellikle A vitamininin diyetle alınması, DNA'nın, proteinlerin ve lipidlerin oksidatif hasardan korunmasıyla bağlantılıdır [ 87 ]. Sindirilmiş karotenoidler, oksidatif DNA hasarını azaltarak kolon hücrelerini reaktif oksijen türlerinin stresine karşı koruyabilirler [ ]. Klorofil a ve b'den oluşan taze meyve ve sebzelerden alınan diyet klorofilleri, yara iyileşmesi, kalsiyum oksalat kristallerinin kontrolü, ksenobiyotik metabolizmanın modülasyonu ve apoptoz indüksiyonu dahil olmak üzere farklı biyolojik potansiyeller göstermiştir [ ].

    3. Biyolojik Aktiviteler
    Brokoli fideleri ve bunların biyoaktif bileşenleri, sağlığı geliştirici birçok potansiyel rol sergilemektedir. Son on yılda, antioksidan, antikanserojenik, antimikrobiyal, antienflamatuar ve diğer bazı özellikler dahil olmak üzere faydalı etkiler, bir dizi in vitro ve in vivo çalışmada geniş çapta araştırılmış ve klinik deneylerde topikal olarak uygulanmıştır [ ]. Özellikle, bu çalışmalar daha çok brokoli filizlerinin ve mikro yeşilliklerin glukozinolatların ve fenolik bileşiklerin fonksiyonları nedeniyle antioksidan ve antikanser aktivitelerine odaklanmıştır. ve ). Bu bölümde brokoli filizlerinin ve mikro yeşilliklerin farklı biyolojik aktivitelerinin bulguları olası etki mekanizmaları ile tartışılacaktır ().

    Tablo 4
    Brokoli filizlerinin ve mikro yeşilliklerin antioksidan aktivitesi.
    Laboratuvar ortamında 1-9 gün DPPH %50 metanol [ ]
    Laboratuvar ortamında 3-14 gün DPPH, ABTS %70 metanol []
    Laboratuvar ortamında 5 gün DPPH, ABTS, FRAP %70 metanol []
    Laboratuvar ortamında 9 gün DPPH, FRAP %90 metanol [ ]
    Laboratuvar ortamında 4-12 gün DPPH, FRAP Metanol [ ]
    Laboratuvar ortamında 3-9 gün DPPH, FRAP, POD, CAT, SOD, GPX %75 metanol [ ]
    Laboratuvar ortamında 7 gün ÇAY, ORAC Metanol [ ]
    Laboratuvar ortamında 2-9 gün T-AOC kiti %50 etanol [ ]
    Laboratuvar ortamında 9 gün DPPH, T-AOC Kiti %75 metanol [ ]
    Laboratuvar ortamında 4 gün T-AOC Kiti %50 metanol [ ]
    Laboratuvar ortamında 5-7 gün DPPH, ABTS, FRAP Metanol [ ]
    Laboratuvar ortamında 7 gün SIKI BAĞLAMAK %50 etanol [ ]
    Laboratuvar ortamında 7 gün SIKI BAĞLAMAK Kaynayan su [ ]
    Laboratuvar ortamında 12 gün DPPH, ABTS etanol [ ]
    Laboratuvar ortamında 3-7gün DPPH diklorometan ]
    Laboratuvar ortamında 6 gün ABTS, FRAP, CHEL, LPO, LOXI, XOI, CAT %50 etanol [ ]
    Laboratuvar ortamında 3-10 gün DPPH, ABTS, FRAP %70 etanol, %70 metanol, kaynar su ]
    Laboratuvar ortamında 3 gün DPPH %80 metanol [ ]
    Laboratuvar ortamında 5-12 gün DPPH, CHEL, LPO Kaynayan su [ ]
    Laboratuvar ortamında 3-11 gün DPPH %80 metanol [ ]
    Laboratuvar ortamında 5-9 gün DPPH %70 etanol [ ]
    Laboratuvar ortamında NS ÇAY Tampon çözüm [ ]
    Laboratuvar ortamında 7 gün DPPH, MA/GC, Karboksilik Asit Heksan, diklorometan, aseton [ ]
    Laboratuvar ortamında 8 gün DPPH, ABTS, FRAP %60 metanol [ ]
    Laboratuvar ortamında 6 gün ABTS, FRAP, CHEL, LPO, LOXI, XOI, CAT, SOD Tampon çözüm [ ]
    Laboratuvar ortamında 9 gün ORAC, TEAC Tampon çözüm [ ]
    Laboratuvar ortamında 6 gün LOXI, XOI %50 metanol [ ]
    canlılarda 4 gün FRAP, GPX Erkek Wistar farelerinin plazması [ ]
    canlılarda NS NQO1, HO-1 Dişi SKH-1 farelerin deri dokusu [ ]
    ABTS, 2,2'-azino-bis-3-etilbenzotiazolin-6-sülfonik asit dekolonizasyon aktivitesi; DPPH, 2,2-difenil-1-pikrilhidrazi radikal süpürme aktivitesi; FRAP, ferrik indirgeyici-antioksidan güç; TEAC, trolox eşdeğer antioksidan kapasitesi; ORAC, oksijen radikali absorbans kapasitesi; POD, peroksidaz aktivitesi; CAT, katalaz aktivitesi; SOD, süperoksit dismutaz aktivitesi; GPX, glutatyon peroksidaz aktivitesi; CHEL, metal şelatlama aktivitesi; LPO, lipid peroksidasyonunun inhibisyonu; LOXI, lipoksijenazın inhibisyonu; XOI, ksantin oksidazın inhibisyonu; NQ01, NAD(P)H-kinon alıcı oksidoredüktaz 1; HO-1, heme oksijenaz-1; MA/GC, malonaldehit/gaz kromatografisi.

    Tablo 5
    Brokoli filizlerinin ve mikro yeşilliklerin antikanser aktivitesi.
    Laboratuvar ortamında 3-7 gün HepG2, CT26 hücreleri Hücre proliferasyonunu inhibe etmek [ ]
    Laboratuvar ortamında 5 gün PC-3 hücreleri apoptozu indüklemek; artan ROS üretimi [ ]
    Laboratuvar ortamında 4 gün HepG2, SW480, BJ hücreleri Hücre proliferasyonunu inhibe etmek; apoptozu indüklemek [ ]
    Laboratuvar ortamında 4-12 gün MAT-LyLu, AT-2 hücreleri Hücre proliferasyonunu ve motilitesini inhibe etmek [ ]
    Laboratuvar ortamında 5 gün HepG2, Caco-2, A549, FL83B hücreleri Hücre döngüsü durmasını ve apoptozu indüklemek; azalan MMP seviyesi ]
    Laboratuvar ortamında 5 gün Caco-2, HT-29, HepG2 hücreleri Hücre proliferasyonunu inhibe etmek []
    Laboratuvar ortamında 8 gün U251, MCF-7, 786-0, NCI-H460, HT-29 hücreleri Hücre proliferasyonunu inhibe etmek [ ]
    Laboratuvar ortamında 5 gün AGS hücreleri Hücre proliferasyonunu ve motilitesini inhibe etmek [ ]
    Laboratuvar ortamında 7 gün LNCaP, PC-3, DU-145 hücreleri PSA salgısını azaltmak; apoptozu indüklemek [ ]
    Laboratuvar ortamında NS MCF7, SUM159 hücreleri Hücre proliferasyonunu inhibe etmek; apoptozu indüklemek [ ]
    Laboratuvar ortamında NS A549, H460, H446, HCC827, H1975, H1299 hücreleri Hücre proliferasyonunu inhibe etmek; apoptozu indüklemek [ ]
    Laboratuvar ortamında NS Caco-2, CCD18-Co hücreleri Hücre döngüsü durmasını ve apoptozu indüklemek; azalan MMP seviyesi; artan ROS üretimi [ ]
    canlılarda NS Dişi NOD/SCID fareleri Göğüs CSC'lerinin in vivo olarak ortadan kaldırılması; Wnt/β-katenin yolunun aşağı regülasyonu [
    canlılarda NS Dişi çıplak BALB/c fareleri PI3K-AKT sinyal yolunun inhibe edilmesi [ ]
    canlılarda 3 gün Dişi SKH-1 tüysüz fareler p53'ün stabilize edilmesi; faz 2 enziminin uyarılması; iNOS yukarı regülasyonunu inhibe etme [ ]
    canlılarda NS C57BL/6 arka planında erkek TRAMP fareleri HDAC3 protein ekspresyonunun azaltılması [ ]
    canlılarda NS SV40 ve Her2/neu fareleri Epigenetik yolakları modüle etmek; epigenetik kontrollü gen ekspresyonunun düzenlenmesi [
    canlılarda NS Dişi Her2/neu fareler Tümör ve epigenetik ile ilgili gen ekspresyonunun düzenlenmesi; artan tümör baskılayıcı gen ekspresyonu [ ]
    canlılarda 3 gün Dişi Sprague-Dawley fareleri GST ve NQO1'i indüklemek [ ]
    HepG2, hepatoselüler karsinom hücre dizisi; PC-3, AT-2, MCF-7, LNCaP, DU-145 ve SUM159, prostat karsinomu hücre hatları; A549, NCI-H460, H460, H446, HCC827, H1975 ve H1299 akciğer karsinomu hücre dizileri; CT26, SW480, Caco-2 ve HT-29, kolorektal adenokarsinom hücre hatları; U251, glioma karsinom hücre çizgisi; 786-0, böbrek karsinomu hücre dizisi; AGS, mide adenokarsinom hücre dizisi; MAT-LyLu, malign karsinom hücre dizisi; BJ, normal deri fibroblast hücre hattı; FL83B, normal karaciğer hücre dizisi; CCD18-Co, normal kolon fibroblast hücre hattı; NOD/SCID, obez olmayan diyabetik/ağır kombine immün yetmezlikli fareler; TRAMP, fare prostat farelerinin transgenik adenokarsinomu; SV40, transgenik C3(1)-SV40 Etiketi (FVB-Tg(C3-1-TAg)cJeg/JegJ) fareleri; Her2/neu, transgenik FVB/N-Tg(MMTVneu)202Mul fareleri; MMP, mitokondriyal membran potansiyeli; PSA, prostata özgü antijen; CSC'ler, kanser kök hücreleri; HDAC, histon deasetilaz enzimleri; GST, S-transferaz; NQO1, NAD(P)H-kinon alıcı oksidoredüktaz 1.


    Olası etki mekanizmaları ile brokoli filizlerinin ve mikro yeşilliklerin biyolojik aktivitelerinin özeti.

    3.1. Antioksidan Aktivite
    Reaktif oksijen türleri (ROS) gibi serbest radikallerin aşırı üretimi veya dahil edilmesi, biyomoleküllerde oksidatif hasara neden olur ve sonuç olarak nörodejeneratif hastalıklar, kardiyovasküler hastalıklar ve belirli yaşa bağlı kanserler dahil olmak üzere birçok kronik hastalığa yol açar ]. ROS'un daha önce memeli hücrelerinde neredeyse yalnızca mitokondriyal metabolizmanın bir sonucu olarak oluştuğu düşünülmüştür. Son zamanlarda, nikotinamid adenin dinükleotid fosfat (NADPH) oksidazlar olarak bilinen hücresel enzimlerin insan vücudunda önemli miktarda ROS ürettiği gösterilmiştir. Ayrıca ROS'un diğer hücresel kaynakları arasında nötrofiller, monositler, endotelyal hücreler, ksantin oksidazlar, sitokrom P450, lipoksijenazlar ve nitrik oksit sentezleri yer alır [ .]. Bu nedenle, ROS'un normal fizyolojik süreçler, oksidatif stres/düzenleme, metabolik hastalıklar ve kronik inflamasyon üzerinde belirgin etkileri vardır. ROS'u hedeflemek, antioksidan, anti-inflamatuar, antidiyabetik ve anti-obezite terapötiklerinde yer alır []. Antioksidanlar, serbest radikalleri ortadan kaldırabilen, ROS oluşumunu engelleyebilen ve ROS'u temizleyebilen doğal ve sentetik bileşiklere ayrılır [ ]. Brokoli filizleri ve mikro yeşillikler üzerine yapılan önceki çalışmalar, bunların hem vitaminler (özellikle askorbik asit ve α-tokoferol) gibi besleyici antioksidanları hem de karotenoidler ve fenolik bileşikler gibi besleyici olmayan antioksidanları içeren doğal olarak oluşan antioksidanların çeşitliliği ile tanındıklarını göstermiştir. ]. Bu bileşiklerin brokoli filizlerindeki toplam antioksidan kapasitenin %80-95'inden sorumlu olduğu bildirilmiştir [ . Brokoli filizlerinin ve mikro yeşilliklerin antioksidan aktivitesi, çeşitli yöntemler kullanılarak yapılan çok sayıda çalışmada belirlenmiştir. Fe2 + şelatlama ve DPPH (2,2-difenil-1-pikrilhidrazil) ve ABTS (2,2'-azino-bis-3-etilbenzotiazolin-6-sülfonik asit) gibi serbest radikalleri temizleme için brokoli filizlerinin ve mikro yeşilliklerin kapasitesi çok sayıda çalışmada gösterilmiştir (.

    Mümkün olan yöntemler arasında, DPPH radikal temizleme deneyi, radikal katyonu bağımsızlık deneyi ABTS ve demir indirgeme antioksidan gücü (sıkı bağlamak) analiz genellikle önceki çalışmalarda kullanılmıştır DPPH yöntemi, diğer test modellerine kıyasla hızlı, basit ve düşük maliyetlidir. Koyu kristalli bir molekül olan DPPH, yedek elektronun molekül üzerinde delokalizasyonu ile oluşan kararlı bir kromojen radikalidir. DPPH süpürme tahlili, DPPH radikalini nötralize etmek için antioksidanların elektron bağışına dayanır. Reaksiyon, 517 nm'de ölçülen DPPH'nin menekşe renginin kaybıyla meydana gelir ve renk bozulması antioksidan etkinliğinin bir göstergesi olarak işlev görür ]. ABTS dekolonizasyon testi, hem hidrofilik hem de lipofilik antioksidanlar için uygundur. Antioksidanların kararlı radikal katyon ABTS + ' yi temizleme yeteneğini ölçmek için bir spektrofotometre kullanır., 734 nm'de absorpsiyona sahip mavi-yeşil bir kromofor molekülü. Antioksidanlar, ABTS + radikal katyonunu elektron veya hidrojen atomu bağışlarıyla nötralize edebilir ve rengini bozabilir []. FRAP tahlili başlangıçta plazmadaki indirgeme gücünü ölçmek için kullanıldı, ancak diğer biyolojik sıvılar ve bitki özleri için genişletildi. Bu nedenle, hem in vitro hem de in vivo deneyler için geçerlidir. FRAP mekanizması, hidrojen atomu transferinden ziyade elektron transferine dayanmaktadır. Test, antioksidanların ferrik demiri azaltma yeteneğini gösterir. Antioksidanlar (593 nm'de absorpsiyon) tarafından düşük pH'da demir iyonu (Fe 3+ )-ligand kompleksinin mavi renkli demir (Fe 2+ ) formuna indirgenmesini ölçer [].

    Ayrıca, brokoli filizlerinin ve mikro yeşilliklerin antioksidan aktivitesinin başka bir mekanizması, lipoksijenaz (LOX) ve ksantin oksidaz (XO) gibi prooksidan enzimlerin aktivitesini inhibe ederek ve aşağıdakiler gibi antioksidan enzimleri aktive ederek birkaç in vitro ve in vivo incelemede doğrulanmıştır. peroksidaz (POD), katalaz (CAT), süperoksit dismutaz (SOD), glutatyon peroksidaz (GPX), NAD(P)H-kinon alıcı oksidoredüktaz 1 (NQO1) ve heme oksijenaz-1 (HO-1) (. Prooksidan enzimler, süperoksit radikallerinin ana biyolojik kaynağı olarak kabul edilirken, antioksidan enzimler, reaktif oksijen türlerinin fazlalığını ortadan kaldırabilir ve yaşlanma sırasında oksidatif hasarı azaltabilir [ ]. Örneğin, sitozolik glutatyon peroksidaz (GPX1), tiroiddeki tioredoksin redüktaz (TR), plazma glutatyon peroksidaz (GPX3) ve plazmanın demiri indirgeme yeteneğinin (FRAP) enzim aktiviteleri, brokoli filizi alımına yanıt olarak 4 haftada önemli ölçüde arttı. -yaşlı Wistar fareleri [ ].

    Özetle, önceki çalışmalar vitaminler, karotenoidler ve fenolik bileşikler açısından zengin brokoli filizi ekstraktlarının hem in vitro hem de in vivo testlerde çok yüksek antioksidan aktivite gösterdiğini göstermiştir. Böylece, ROS'un neden olduğu kronik hastalık riskini azaltmak için antioksidan terapötikler için uygulanabilirler. İlginç bir şekilde, brokoli fidelerinin antioksidan kapasitesi kapsamlı bir şekilde rapor edilmiş olmasına rağmen, şu anda araştırmacılar ve araştırmacılar tarafından hala önemli ölçüde ilgi görmektedir [

    3.2. Antikanser Aktivitesi
    Son on yılda kanserden korunmada doğal ürünlerin koruyucu etkilerine yönelik birçok çalışma ve proje desteklenmiştir. Kansere karşı koruyucu rol, çoğunlukla turpgillerden tipik olarak sebzelerde bulunan yüksek GLS içeriğine bağlanmıştır . Brokoli filizleri ve mikro yeşillikler, apoptozu indükleyerek ve hücre döngüsü ilerlemesini durdurarak çalışan iyi bilinen bir kanser kemoterapötik ajan sınıfı olan zengin bir GLS kaynağı ve hidroliz ürünleri (ICT'ler, özellikle SFN) olarak değerlenmiştir. Potansiyel etki mekanizmaları temel olarak kanserde proliferasyonun inhibisyonu ve apoptozun indüklenmesini içerir.. Bu nedenle, brokoli filizlerinin ve mikro yeşilliklerin antikanser aktivitesini göstermek için antiproliferatif aktiviteyi belirlemek için birçok in vitro test yapılmıştır. Elde ettikleri sonuçlar, brokoli fidelerinin, hepatoselüler karsinom hücreleri (HepG2), prostat karsinom hücreleri (PC-3, AT-2 ve SUM159), akciğer karsinom hücreleri (A549) ve kolorektal dahil olmak üzere farklı kanser hücre dizilerine karşı güçlü sitotoksisite sergilediğini gösterdi. adenokarsinom hücreleri (Caco-2 ve HT-29) Bu çalışmalarda, son derece etkili bir IC 50 değerleri 29 ila 190 ug / mL olarak bulunmuştur. Öte yandan, brokoli fidelerinin seçiciliği, brokoli örneklerinin muamelesinden sonra normal deri fibroblastlarında (BJ), normal kolon fibroblastlarında (CCD18-Co) ve normal karaciğer hücrelerinde (FL83B) canlılıkları üzerinde hiçbir toksik etki göstermeyerek bildirilmiştir.

    Kanser aslında kontrolsüz hücre bölünmesi hastalığıdır. Hücre proliferasyonu ve apoptoz arasındaki dengesizlikten kaynaklanır [. Gelişimi ve ilerlemesi genellikle hücre döngüsü düzenleyicilerinin aktivite bozukluğu ile ilişkilidir. Programlanmış hücre ölümü mekanizmasındaki kusurlar da tümör patogenezine önemli bir katkı sağlar [. DNA hasarına yol açabilir onlar ve hücre döngüsünün durmasına neden olan bir kompleks sinyal ağı ve apoptoz indüksiyonu [etkinleştirirler nedenle, birçok kemoterapötik ajanlar, kanser hücrelerine karşı sitotoksik aktivite göstermemektedir . G1/S veya G2/M fazlarında tutuklamalara yol açan hücre döngüsü fazını ve kontrol noktası sinyal yolunu hedeflemek, kanser tedavisi için umut verici bir fırsat sağlayacaktır. Ayrıca, hücre apoptozunu tetiklemek, potansiyel kemoterapötik ajanlar için etkili bir strateji olabilir Brokoli filizlerinin ve mikro yeşilliklerin antiproliferatif aktivitesini doğrulamak için, birkaç in vitro çalışma, hücre döngüsü durması ve apoptozu indüklemeye dayalı hücre ölüm mekanizmasını ortaya çıkardı.). Sonuçları, hücre döngüsü duraklamalarını (açıkça G0/G1 ve S fazlarında) ve apoptozun bir belirteci olarak kabul edilen subG1 DNA içeriği ile hücre yüzdesinde önemli artışlar gösterdi. Ayrıca, mitokondriyal değişiklikler içsel apoptotik yolu aktive edebilir. Mitokondriyal membran potansiyelinin (MMP) kaybı, kaspaz-9 ve sitokrom c gibi apoptoza bağlı birkaç proteinin aktivasyonuna yol açar [ Bu nedenle, birkaç çalışma, programlanmış hücre ölümünün mekanizmasını kanıtlamak için brokoli fideleri ile tedaviden sonra kanser hücrelerinin MMP seviyelerinde kayda değer bir düşüş olduğunu göstermiştir [

    Ayrıca, C57BL/6 fareleri, BALB/c fareleri, SKH-1 tüysüz fareler ve Sprague-Dawley sıçanları gibi brokoli filizlerinin ve mikro yeşilliklerin antikanser etkilerini ve ilgili moleküler mekanizmalarını göstermek için bazı in vivo karsinogenez modelleri kullanıldı Brokoli filizlerinden ekstrakte edilen SFN, meme kanseri kök hücrelerinin inhibisyonunu gösterdi ve obez olmayan diyabetik/şiddetli kombine immün yetmezlikli ksenograft modelinde Wnt/β-katenin kendi kendini yenileme yolunu aşağı regüle etti []. Brokoli tohumlarından ve filizlerinden izole edilen SFN, PI3K-AKT sinyal yolunu inhibe ederek akciğer kanseri hücre dizilerinde ve akciğer kanseri ksenograftlı çıplak BALB/c farelerinde de antikanser etkiler sergilemiştir [ Brokoli filizi alımına sahip fare prostat modelinin transgenik adenokarsinomu, prostat kanseri oluşumunda ve prostatın epitel hücrelerinde HDAC3 protein ekspresyonunda önemli bir düşüş gösterdi. HDAC3, tümör baskılayıcı genleri kapatan ve onkogenlerin ekspresyonunu destekleyen histon deasetilaz enzimlerinden biridir [ .]. Yetişkin Her2/neu farelerine uygulanan brokoli filizi diyeti, meme kanseri üzerinde hem önleyici hem de baskılayıcı etkiler göstermiştir. Bu koruyucu etkiler, tümör ve epigenetik ile ilişkili gen ekspresyonu ile ilişkilendirildi ve histon asetilasyonu, DNA metilasyonu ve DNA hidroksimetilasyon seviyelerini değiştirdi [ ]. Sıçan modeline brokoli filizi ekstraktının diyetle uygulanması, mesanede oksidanlara ve karsinojenlere karşı önemli enzimler olan glutatyon S-transferaz ve NAD(P)H-kinon oksidoredüktaz 1'i indükleyerek mesane kanseri gelişimini engellemiştir [

    3.3. Antimikrobiyal etkinlik
    Brokolinin antimikrobiyal kapasitesi çeşitli yayınlarda bildirilmiştir; ancak bu çalışmaların çoğu brokoli çiçeklerine odaklandı. Brokoli filizlerinin patojenik bakteriler üzerindeki zararlı etkisini gösteren birkaç rapor var. Yüksek seviyelerde gallik asit, eskületin, ferulik asit ve mirisetin içeren brokoli filizlerinin hem Gram pozitif bakteriler ( Staphylococcus aureus ve Bacillus subtilis ) hem de Gram negatif bakteriler ( Salmonella typhimurium ve Escherichia ) dahil olmak üzere gıda kaynaklı patojenlere karşı antibakteriyel aktiviteye sahip olduğunu araştıran bir çalışma coli ), minimum inhibisyon konsantrasyonu (MIC) değerleri 390 ila 1560 µg/mL [. Bu çalışma, Gram-pozitif bakterilerin, diğer bitki özlerinin daha önce yayınlanmış sonuçlarına benzer şekilde, Gram-negatif bakterilere göre brokoli filizi özüne daha duyarlı olduğunu ortaya koydu [ ]. Muhtemel sebep, bu iki bakteri sınıfı arasındaki hücre duvarındaki yapısal farklılıklar olabilir. Gram-negatif bakteriler, doğal bileşikler de dahil olmak üzere birçok maddenin erişimini önlemek için hidrofilik bir tabaka olan ek bir dış zar ile çevrilidir

    Başka bir in vitro çalışma, brokoli filizlerinin , yüksek derecede aktif inhibisyon bölgeleri (>5 cm) ile ana anti- Helicobacter aktif bileşik olarak sülforafanın mevcudiyeti ile Helicobacter pylori'ye karşı güçlü bakterisidal aktivitesini bildirmiştir Birçok rapor, fenolikler, flavonoidler ve glukozinolatlar gibi bitki kaynaklı biyoaktif bileşiklerin, çeşitli mikroorganizmaların büyümesini ve aktivitesini inhibe edebildiğini göstermiştir atojenik bakterilere, mayalara ve fitopatojenik mantarlara karşı antimikrobiyal aktivite, brokoli çiçeği özünde birçok antimikrobiyal peptidin varlığıyla da kanıtlanmıştır
    Ayrıca, 2 ay boyunca sülforafan açısından zengin brokoli filizlerinin günlük alımının, Helicobacter pylori ile enfekte olmuş farelerde ve hastalarda gastrik bakteriyel kolonizasyonu azalttığı ve gastriti azalttığı gösterilmiştir ]. Başka bir klinik deneyde, yüksek sülforafanlı brokoli filizi tozu , pozitif H. pylori olan tip 2 diyabetli hastalarda H. pylori eradikasyonu üzerinde de önemli bir etki göstermiştir [
    Toplu olarak, bu bulgular brokoli filizi özlerinin gıda ve ilaç endüstrisinde potansiyel bir antimikrobiyal madde kaynağı olarak hizmet edebileceğini göstermektedir.

    3.4. Anti-inflamatuar Aktivite
    Birkaç çalışma brokoli filizlerinin ve biyoaktif bileşenlerinin anti-inflamatuar aktiviteye sahip olduğunu kanıtladı. Bu nedenle, brokoli filizlerinin ve mikro yeşilliklerin uygulanması, ülseratif kolit ve Crohn hastalığı gibi inflamatuar bağırsak hastalıklarının önlenmesi ve tedavisinde potansiyele sahiptir [ Brokoli filizlerinin anti-inflamatuar mekanizmaları muhtemelen nükleer faktör-kappa B (NF-κB) ve nükleer faktör eritroid 2-ilişkili faktör 2 (Nrf2) sinyal yollarıyla ilişkilidir [ . Hem in vitro hem de in vivo deneylerin yanı sıra klinik deneyler, esas olarak, yüksek konsantrasyonlarda sülforafan ve antosiyaninler, izokersetin, klorojenik ve sinnamik asitler dahil bir grup fenolik bileşik gösteren brokoli filizlerinin iltihap önleyici etkilerini, iltihaplanmayı inhibe ederek sergiler. nitrik oksit (NO) gibi aracılar, tümör nekroz faktörü α (TNF-α), interlökin-6 (IL-6) ve IL-1β gibi proinflamatuar sitokinlerin seviyelerini azaltır ve anti-inflamatuar seviyelerini arttırır IL-10 ve IL-22 gibi sitokinler [ Örneğin, bir çalışma, sülforafanla zenginleştirilmiş brokoli filizlerinin, NF-κB sinyal yolunun aktivasyonunu ve enflamatuar proteinlerin (uyarılabilir nitrik oksit sentaz (iNOS), siklooksijenaz 2 (COX-2)), TNF-α, IL- sekresyonlarını inhibe ettiğini göstermiştir. Mikroglial hücrelerde (BV2) ve erkek ICR (Kanser Araştırma Enstitüsü) farelerinde 6, IL-1p ve prostaglandin E2 (PGE2)). Bu çalışmada, brokoli örnekleri ayrıca normal BV2 hücrelerinde Nrf2 ve heme oksijenaz-1 (HO-1) ekspresyonunu ve fare beyin dokusu örneklerinde skopolamin kaynaklı amneziye karşı yukarı regüle etmiştir [ ]. İyot eksikliği olan Wistar sıçanlarında immünolojik parametreleri analiz etmek için, brokoli filizlerinin diyete eklenmesinden sonra IL-10 konsantrasyonunda önemli bir farklılık olmamasının yanı sıra IL-6 seviyesinde önemli bir düşüş gözlemlendi [ Yüksek sülforafanlı brokoli filizleri ayrıca tip 2 diyabetli hastalarda serum yüksek duyarlı C reaktif protein (hs-CRP), IL-6 ve TNF-α konsantrasyonlarını azaltarak inflamatuar belirteçler üzerinde olumlu etkiler göstermiştir [

    3.5. Antidiyabetik Aktivite
    Brokoli, tip 2 diyabet için ek tedavi olarak ve uzun vadeli komplikasyonlarının önlenmesi olarak kabul edilen birkaç sebzeden biridir [ . Birkaç çalışma, diyabetli hastalar için brokoli filizlerinin ve mikro yeşilliklerin potansiyel faydalarını araştırdı. Brokoli filizi tozunun biyoaktif bileşenlerinin kullanımıyla yeni bir yaklaşım olarak tip 2 diyabetli hastalarda insülin direnci üzerindeki etkileri bir çalışmada belirlendi. Sonuçlar önemli ölçüde diyabet komplikasyonları [serum insülin konsantrasyonunu azaltmak ve azaltabilir sülforafan yüksek bir konsantrasyon ihtiva eden brokkoli filiz, toz . Başka bir raporda, genç brokoli filizlerinden ekstrakte edilen sülforafanın potansiyel etkinliği, tip 2 diyabette tamamlayıcı tedavi için etkili bir seçenek olarak doğrulanmıştır. Hiperglisemi ve oksidatif koşullarda glukoz homeostazına katkıda bulunan bazı peroksizom proliferatörleri ile aktive olan reseptörleri indükleyebilir [ .

    3.6. Anti-Obezite Aktivitesi
    Obezite dünya çapında bir sağlık sorunu haline geldi ve kardiyovasküler hastalık ve tip 2 diyabet gibi olumsuz metabolik bozukluklara yol açtı. Birkaç çalışma, brokoli filizlerinin lipid metabolizmasını düzenleyerek obezite üzerindeki olumlu etkilerini belgelemiştir. Çift kör bir klinik çalışmada, tip 2 diyabetli hastalarda tamamlayıcı tedavi olarak brokoli filizi tozu, obezite ve kardiyovasküler hastalık için risk faktörleri olarak lipit profilleri ve oksitlenmiş düşük yoğunluklu lipoprotein oranı (OX-LDL/LDL) üzerinde faydalı etkilere sahip olabilir. ]. Brokoli filizlerinin lipid metabolizmasını düzenleyen başka bir mekanizma, Nrf2 yolunu indükleme sülforafan kapasitesi ile ilişkili olabilir [ . Yakın zamanda yapılan bir araştırma, brokoli filizlerinden ekstrakte edilen glukofaninin lipid birikimini azaltabileceğini ve Nrf2 aktivasyonunu artırabileceğini ortaya koydu. Glukoneogenez ve lipogenezde yer alan çoklu genlerin ekspresyonunun aşağı regülasyonuna yol açarak obezite ve diyabeti hafifletir [ .

    3.7. Diğer Etkiler
    Brokoli filizlerinin ve mikro yeşilliklerin sağlığı geliştirici diğer bazı etkileri de in vitro, in vivo ve klinik araştırmalarla araştırılmıştır. Birkaç çalışma, brokoli filizlerinin, ksantin oksidaz (XO) inhibitörleri olarak işlev gören iyi bir biyoaktif bileşik kaynağı olduğunu göstermiştir [ ]. XO, hipoksantin ve ksantinin ürik aside metabolizmasını katalize eden enzimdir, bu nedenle XO aktivitesinin inhibe edilmesi gut veya diğer XO kaynaklı hastalıkların tedavisinde potansiyel olarak faydalı olabilir [ ]. Hamilelik ve erken yenidoğan döneminde brokoli filizi takviyesi, yeni doğan sıçanlarda plasental yetmezlik sonrası beyin hasarını azaltabilir. Bulgular, serebral palsi ve plasental yetmezliğe bağlı sakatlıkların önlenmesi için yeni bir yaklaşım sunmaktadır [ ]. Brokoli filizi ekstraktının analjezik ve antinosiseptif etkileri, iki in vivo deneysel nosisepsiyon modeli kullanılarak opioid mekanizması ile kanıtlanmıştır. Bu çalışma, brokoli filizlerinin ağrı tedavisindeki potansiyel aktivitesini göstermektedir [ . Çift kör bir çalışmada, brokoli filizi homojenatlarının kısa süreli yutulması, virüs kaynaklı inflamasyon belirteçlerini önemli ölçüde azaltarak ve virüs miktarını azaltarak sigara içenlerde influenza virüsüne karşı burun tepkileri üzerinde faydalı etkiler göstermiştir. Sigara içenlerde ve havadaki kirleticilere maruz kalan diğer kişilerde influenza riskini önlemek için umut verici bir strateji olabilir [

    4. Sonuçlar ve Gelecek Perspektifler
    Son yıllarda brokoli filizi ve mikro yeşillikler en çok tüketilen sebze ürünlerinden biridir. Tüketicilerin sağlığı ve uzun ömürlülüğü destekleyen diyetlere artan ilgisi ile fonksiyonel gıdalar veya nutrasötik gıdalar olarak tanınmaya başladılar. Sonuç olarak, brokoli fidelerinin sağlığı geliştirici bileşikleri, gıda ve farmasötik ürün formülasyonlarına entegre edilmek üzere ekstrakte edilmiş ve izole edilmiştir. Son on yılda, bu brokoli ürünlerinin fonksiyonel özelliklerinin ekstraksiyonu, izolasyonu ve karakterizasyonu sayısız bilimsel yayınla kanıtlanmıştır. Bu derlemede, brokoli filizlerinin ve mikro yeşilliklerin biyoaktif bileşenleri, biyoaktiviteleri ve moleküler mekanizmaları hakkında son on yılın araştırma bulgularını ilk kez özetledik. Glukozinolatlar, fenolikler, flavonoidler, vitaminler, mineraller ve pigmentler dahil olmak üzere bol miktarda önemli doğal bileşik kaynağı sundukları kanıtlanmıştır. Özellikle glukozinolatlar ve bunların hidroliz ürünleri analiz edilen ana bileşenlerdir ve bunu detaylı bir profile sahip fenolik bileşikler takip eder. Ayrıca, önceki çalışmalar brokoli fidelerinin antioksidan, antikanser, antimikrobiyal ve antienflamatuar gibi çeşitli biyolojik aktivitelerinin yanı sıra kanser, diyabet ve obezite hastaları için potansiyel olarak faydalı etkilerine odaklanmıştır. Genel olarak, toksik değildirler veya düşük toksisiteye sahiptirler. bunu detaylı bir profile sahip fenolik bileşikler takip eder. Ayrıca, önceki çalışmalar brokoli fidelerinin antioksidan, antikanser, antimikrobiyal ve antienflamatuar gibi çeşitli biyolojik aktivitelerinin yanı sıra kanser, diyabet ve obezite hastaları için potansiyel olarak faydalı etkilerine odaklanmıştır. Genel olarak, toksik değildirler veya düşük toksisiteye sahiptirler. bunu detaylı bir profile sahip fenolik bileşikler takip eder. Ayrıca, önceki çalışmalar brokoli fidelerinin antioksidan, antikanser, antimikrobiyal ve antienflamatuar gibi çeşitli biyolojik aktivitelerinin yanı sıra kanser, diyabet ve obezite hastaları için potansiyel olarak faydalı etkilerine odaklanmıştır. Genel olarak, toksik değildirler veya düşük toksisiteye sahiptirler.

    Umarım, bu güncellenmiş inceleme, tüketicilerin gıda seçimleri için bir referans olmasının yanı sıra, brokoli filizlerine ve mikro yeşilliklere ve bunların gıda ve nutrasötik endüstrilerindeki diğer uygulamalarına ve hatta kanser kemopreventif ajanları olarak klinik çalışmalarda daha fazla dikkat çekebilir.

    Gelecekte, brokoli filizlerinde ve mikro yeşilliklerde daha fazla biyoaktif bileşik izole edilecek, tanımlanacak ve değerlendirilecektir. Kardiyovasküler koruyucu, hepatoprotektif, nöroprotektif veya enzim inhibe edici potansiyeller gibi hem in vitro hem de in vivo modellerde tanınmayan biyolojik fonksiyonları ve bunların altında yatan etki modunu ve moleküler mekanizmalarını keşfetmek için daha fazla araştırma gereklidir. Ayrıca, brokoli fidelerinin insanlar üzerindeki bu sağlığı geliştirici faydalarını doğrulamak için iyi tasarlanmış klinik deneyler yapılmalıdır.

    Yazar Katkıları
    Kavramsallaştırma, TNL, C.-HC ve P.-CH; metodoloji, TNL, C.-HC ve P.-CH; doğrulama, C.-HC ve P.-CH; veri iyileştirme, TNL; yazma—orijinal taslak hazırlama, TNL; yazma—inceleme ve düzenleme, TNL, C.-HC ve P.-CH; süpervizyon, C.-HC ve P.-CH Tüm yazarlar makalenin yayınlanan versiyonunu okumuş ve kabul etmiştir.

    Finansman
    Bu araştırma hiçbir dış finansman almamıştır.

    Çıkar çatışmaları
    Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

    Referanslar

    Yorum yap


    • #3
      Otizm spektrum bozukluğunun (ASD) sülforafan tedavisi

      Kanwaljit Singh , a, b Susan L. Connors , a Eric A. Macklin , c Kirby D. Smith , d Jed W. Fahey , e Paul Talalay , e, 1 ve Andrew W. Zimmerman a, b, 1
      Yazar bilgileri Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Sayfa E349'daki cilt 112'deki "Sülforafan denemesinde yaygın olmayan önlemlerin kullanımı " mektubuna bakın .
      Sayfa E350'deki cilt 112'de " Scahill'e Yanıt: Otizmde davranışsal sonuç ölçütleri " bölümüne bakın .
      Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler

      Ek Malzemeler
      Git: ÖNEMI

      Otizm spektrum bozukluğu (OSB), iletişim ve sosyal etkileşimi ve tekrarlayan stereotipik davranışları ve dili kapsayan, ağırlıklı olarak erkek bireylerin %1-2'sini etkiler ve belgelenmiş, mekanizmaya dayalı tedavisi olmayan çok büyük bir tıbbi ve ekonomik sorundur. Plasebo kontrollü, randomize, çift-kör bir klinik çalışmada, ASD'li 29 genç erkeğe 18 hafta fitokimyasal sülforafan (brokoli filizlerinden türetilmiştir) için günlük oral uygulama, 15 plasebo alıcısına kıyasla davranışı önemli ölçüde (ve geri dönüşümlü olarak) iyileştirmiştir. Davranış, hem ebeveynler/bakıcılar hem de doktorlar tarafından yaygın olarak kabul edilen üç ölçü ile ölçülmüştür. İhmal edilebilir toksisite gösteren sülforafan, aerobik hücreleri oksidatif strese, inflamasyona ve DNA hasarına karşı koruyan genleri yukarı regüle ettiği için seçildi.

      Git: SOYUT

      Hem iletişim hem de sosyal etkileşimde bozulma ve stereotipik davranışlarla karakterize edilen otizm spektrum bozukluğu (ASD), ağırlıklı olarak erkekler olmak üzere 68'de 1'i etkiler. OSB'nin mediko-ekonomik yükleri çok büyüktür ve hiçbir tanınmış tedavi OSB'nin temel özelliklerini hedeflememektedir. Plasebo kontrollü, çift kör, randomize bir çalışmada, orta ila şiddetli OSB'li genç erkekler (13-27 yaş arası) , brokoli filizi özlerinden elde edilen fitokimyasal sülforafan ( n = 29) veya ayırt edilemeyen plasebo ( n = 29) aldı.= 15). 18 hafta boyunca günlük oral sülforafan dozlarının (50-150 µmol) ve ardından 4 hafta tedavi edilmemesinin davranış üzerindeki etkileri, ebeveynler/bakıcılar ve doktorlar tarafından tamamlanan ve yaygın olarak kabul edilen üç davranışsal önlemle ölçülmüştür: Aberrant Davranış Kontrol Listesi (ABC) , Sosyal Duyarlılık Ölçeği (SRS) ve Klinik Küresel İzlenim İyileştirme Ölçeği (CGI-I). ABC ve SRS için başlangıç ​​puanları, plasebo ve sülforafana atanan katılımcılar için yakından eşleştirildi. 18 haftadan sonra, plasebo alan katılımcılar minimal bir değişiklik yaşarken (<%3.3), sülforafan alanlar önemli düşüşler (davranışta iyileşme) gösterdi: ABC için %34 ( P <0.001, tedavileri karşılaştırarak) ve SRS skorları için %17 ( P= 0.017). CGI-I'de, sülforafan alan önemli ölçüde daha fazla sayıda katılımcı, sosyal etkileşim, anormal davranış ve sözlü iletişimde iyileşme gösterdi ( P = 0.015-0.007). Sülforafanın kesilmesiyle birlikte, tüm ölçeklerdeki toplam puanlar tedavi öncesi seviyelere doğru yükseldi. Düşük toksisiteye sahip olduğu kabul edilen diyet sülforafan, oksidatif stres ve düşük antioksidan kapasite, depresif glutatyon sentezi, azaltılmış mitokondriyal fonksiyon ve oksidatif fosforilasyon, artan lipid peroksidasyonu ve nöroinflamasyon dahil olmak üzere OSB ile ilişkili anormallikleri tersine çevirme kapasitesi nedeniyle seçilmiştir. Otizm spektrum bozukluğu (ASD), sosyal olarak iletişim ve etkileşimde bozulma ve sınırlı ve tekrarlayan davranış, ilgi alanları ve etkinliklerle karakterize nörogelişimsel anormallikleri içerir ( 1 ). Amerika Birleşik Devletleri'nde OSB'nin prevalansı, 8 yaşındaki çocuklar arasında 68'de 1'dir ve belirgin erkek (4,5:1) baskındır ( 2). OSB'nin temel semptomları için onaylanmış farmakolojik tedaviler mevcut değildir. Burada, plasebo kontrollü, çift kör, randomize bir klinik çalışmada, 4-18 hafta boyunca günlük sülforafan tedavisinin, orta ila şiddetli otizm teşhisi konan genç erkeklerin çoğunda anormal davranışlarda ve sosyal bozulmada önemli iyileşmeler sağladığını bildiriyoruz. ve bu iyileşmenin tedavinin kesilmesiyle gerilediği görüldü. Klinik iyileşmeye ilişkin hekim ve ebeveyn/bakıcı izlenimleri, davranışsal sonuç ölçütleriyle değerlendirildi.

      Sulforaphane, brokoliden elde edilen bir izotiyosiyanattır. Terapötik potansiyeli, aerobik hücrelerin kendilerini oksidatif strese, inflamasyona, DNA'ya zarar veren elektrofillere ve radyasyona karşı koruduğu mekanizmaları kontrol eden transkripsiyonel olarak yukarı regüle eden genlerdeki güçlü aktivitesine dayanır ( 3 , 4 ). Bazal koşullar altında, bu koruyucu sistemler maksimum kapasitede çalışmaz, ancak sülforafan tarafından daha yüksek aktivite seviyelerine indüklenebilir, böylece malignite ve diğer kronik hastalıkların gelişme risklerini azaltır ( 5– 10 ). Sülforafan şimdi yaygın klinik değerlendirmededir ( 10 ).

      ASD'yi tedavi etmek için sülforafanın test edilmesi kararı dört temele dayanıyordu. İlk olarak, kapsamlı kanıtlar, sülforafanın, oksidatif stres ve azaltılmış antioksidan kapasite, glutatyon sentezindeki kusurlar, mitokondriyal işlev bozukluğu ve düşük oksidatif fosforilasyon, artan lipid peroksidasyonu ve nöroinflamasyon dahil olmak üzere OSB ile ilişkili aynı biyokimyasal ve moleküler anormalliklerin çoğuna karşı etkili olduğunu göstermektedir ( 11– 16 ). Bu anomalilerin etiyolojik mi yoksa ikincil belirtiler mi olduğu belirsiz olsa da, düzeltilmesi genellikle OSB davranışını iyileştirir ( 17 ).

      İkincisi, sülforafan da dahil olmak üzere çeşitli küçük moleküller, yukarıda bahsedilen zarar verici süreçlerin çoğunu düzenleyen “stres proteomunu” aktive ederek bir dizi ilişkisiz genetik bozukluğu iyileştirebilir. Hidroksiüre, fenilbutirat ve trikostatin A'nın yanı sıra sülforafan'ın da in vitro olarak, birbiriyle ilişkisiz bir dizi genetik bozuklukta hücresel homeostazı yeniden kurmak için terapötik potansiyele sahip olduğu gösterilmiştir ( 18 ).

      Üçüncüsü, sülforafan, turpgillerden bitki açısından zengin diyetlerde yaygın olarak tüketilen öncül glukozinolat glukorafaninden türetilen bir diyet fitokimyasalıdır ve kullanım amacına bağlı olarak bir gıda, besin takviyesi veya ilaç olarak değerlendirilebilir. Bu nedenle sülforafanın düşük toksisiteye sahip olduğu kabul edilir ve insanlara uygulanması iyi tolere edilir ( 10 , 19 , 20 ).

      Dördüncüsü, yaygın anekdot raporları, ateşin birçok otistik hastanın rahatsız davranışlarını dramatik ancak geçici olarak iyileştirebileceğini öne sürdü ( 21 ). Özellikle, iyileşme derecesi (çoğunlukla basmakalıp davranışlarda ve uygunsuz konuşmada) ateş veya otizmin şiddetiyle ilgisizdi ( 21 ). Bu çalışma, ateş yanıtının aydınlatılmasının OSB'nin mekanizmaları hakkında bilgi sağlayabileceğini ve yeni terapötik yaklaşımlara işaret edebileceğini açıkça öne sürdü ( 21 , 22 ). Ateş, sinaptik iletim dahil olmak üzere CNS'deki çoklu hücresel süreçlerin merkezinde yer alan ısı şoku proteinlerini ve ilgili mekanizmaları yukarı düzenler ( 23 , 24 )) ve OSB'de deprese olan uzun menzilli serebral kortikal bağlantıyı iyileştirebilir ( 25 ). Sülforafan ayrıca ısı şoku tepkisinin ifadesini yukarı doğru düzenler ( 26 ).

      Diyetle elde edilen seviyelerde günlük sülforafan tedavisinin OSB'de sosyal olarak bozulmuş davranışın şiddetini azaltabileceğini varsaydık. Davranış, müdahaleden önce, müdahale sırasında ve müdahaleden sonraki dönemlerde geniş çapta geçerliliği olan üç davranışsal sonuç ölçütü ile doğrudan ölçülmüştür (1). Ebeveynler/bakıcılar Sapık Davranış Kontrol Listesini (ABC) ( 27 ) ve Sosyal Duyarlılık Ölçeğini (SRS) ( 28 ) doldurmuştur. Çalışma doktorları, Klinik Genel İzlenim Şiddeti (CGI-S) ve Klinik Genel İzlenim İyileştirme (CGI-I) ölçeklerini tamamladı ( 29 , 30 ).
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı pnas.1416940111fig01.jpg
      1.
      ASD'de sülforafanın etkilerinin incelenmesi için program.

      Git: SONUÇLAR

      Katılımcı Özellikleri.

      Planlanan tüm testlerin %90'ından fazlası, plasebo veya sülforafan tedavisi alan ve ilk tekrar ziyareti için geri dönen (4. hafta) 40 katılımcı üzerinde tamamlandı. Yirmi iki katılımcı (6 plasebo, 16 sülforafan) ayrıca tedavi sona erdikten sonra 22 haftada, 4 haftada test edildi (tablo 1ve Şekil S1 ). Dört katılımcı (bir plasebo, üç sülforafan) ilk tedavi ziyaretlerinden önce takipten çıktı. Tablo 1.

      Sülforafan tedavisinin Aberrant Behavior Checklist (ABC) ve Sosyal Duyarlılık Ölçeği (SRS) puanlarına etkisi
      Ölçek ve tedavi Toplam ve ortalama toplam puanlardaki değişiklikler
      Gözlem süresi (hafta)
      0 4 10 18 22
      ABC
       plasebo
        taban çizgisi 60.14 59.77 58.85 58.10 57.67
        müdahale noktası 60.14 60.54 62.15 56.10 55.83
        Değiştir * 0 0.77 ± 1.84 3.31 ± 3.50 -2,00 ± 4,59 −1,83 ± 6,60
        n 14 13 13 10 6
       sülforafan
        taban çizgisi 62.77 62.77 62.34 63.88 69.16
        müdahale noktası 62.77 50.08 42.73 42.44 58.44
        Değiştir * 0 -12,69 ± 4,17 -19.61 ± 5.95 −21,44 ± 4,34 -10.72 ± 5.07
        n 26 26 22 25 16
        P değeri (tedaviler arasında) † - 0.035 0.002 <0,001 0.33
      SRS
       plasebo
        taban çizgisi 120.21 120.21 118.85 119,55 122.00
        müdahale noktası 120.21 112.43 117.46 117.55 115.33
        Değiştir * 0 -7,79 ± 3,09 -1,38 ± 3,72 -2,00 ± 3,46 -6,67 ± 3,82
        n 14 14 13 11 6
       sülforafan
        taban çizgisi 120.15 120.88 118.26 120.96 116.91
        müdahale noktası 120.15 106.12 103.78 100.56 109.88
        Değiştir * 0 -14,76 ± 3,79 -14,48 ± 5,72 -20,40 ± 4,54 -7,03 ± 4,20
        n 26 25 23 25 16
        P değeri (tedaviler arasında) † - 0.29 0.080 0.017 0.87
      Ayrı bir pencerede aç
      En az bir müdahale sonrası ölçümü tamamlayan katılımcıların ABC ve SRS toplam puanları ( n = 40). ABC ve SRS puanları ve bunların taban çizgisinden değişiklikleri, ham, ayarlanmamış değerlerdir ve P değerleri, tekrarlanan ölçümler için ayarlanan doğrusal karışık modeldendir.

      * Bireylerin 4, 10, 18 veya 22. haftadaki puanları, aynı bireyin 0 zamanındaki puanlarından (“Temel”); farklılıkların ortalaması alındı ​​ve ortalama ± SEM olarak sunuldu. Her bir zaman periyodunda ( n ) puanları alınan bireylerin sayısı değiştiğinden, her değişikliği hesaplamak için kullanılan temel puan da öyleydi.
      † Karma etkiler genel doğrusal modelden belirlenen P değerleri.
      Hepsi erkek olan katılımcılar, kayıt sırasında 13-27 yaşındaydı (ortanca: 17 yaşında). Katılımcıların büyük bir çoğunluğu (40/32; %80) tarafından ateşle ilgili davranışsal iyileşme öyküsü verildi. Sülforafan ve plasebo gruplarına katılanlar iyi eşleştirildi ve çeşitli demografik, davranışsal ve klinik özellikler, davranışsal sonuç skoru ölçümleri, fizik muayene anormallikleri, kan kimyası, hematoloji ve idrar tahlili açısından başlangıçta farklılık göstermedi ( Tablo S1 ).

      Sonuç Ölçütlerinin Analizi.

      26 sülforafan ile tedavi edilen ve 14 plasebo alıcısının kayıttan 18 haftalık tedavi sonuna kadar ve 4 haftalık bir iyileşme döneminden sonra toplam ABC ve SRS davranış puanlarındaki toplam ve değişiklikler aşağıda gösterilmiştir.Fig. 2-4veTablolar 1ve​ve 2.2. Tedavi grubu ortalama ABC skorları 4, 10 ve 18. haftalarda önemli ölçüde farklılık gösterdi (Şekil 2 B ve Esırasıyla ABC ve SRS için). 18 haftada ABC'de %34 ve SRS skorlarında %17'lik bir azalma oldu ve bunlar tedavinin kesilmesiyle birlikte anlamlı olmayan farklılıklara yöneldi (Şekil 2 B ve EveTablolar 1ve​ve 22).
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı pnas.1416940111fig02.jpg
      incir. 2.
      Toplam ABC ve SRS puanlarındaki değişiklikler. 4, 10 ve 18 hafta boyunca günlük olarak plasebo (başlangıçta n = 14) veya sülforafan (başlangıçta n = 26) ile tedavi edilen kırk erkek ASD katılımcısı , ardından son 4 haftalık tedavi edilmemiş bir süre (22 hafta). Panel A (ABC) ve D (SRS) tüm gözlemleri gösterir. 4, 10, 18 ve 22 haftalık ham, düzeltilmemiş toplam puanlardaki (±SEM) değişikliklerin ortalamaları ABC için B'de ve SRS için E'de gösterilmektedir. Sülforafan tedavisi üzerine ABC skorundaki azalmalar 4, 10 ve 18 haftalarda sırasıyla -%20.2 ( P = 0.035), -%31.5 ( P = 0.002) ve -%33.6 ( P < 0.001) idi. SRS'deki karşılık gelen değişiklikler -%12,2 idi (P = 0,29), -%12,2 ( P = 0,080) ve -%16,8 ( P = 0,017). Paneller C (ABC) ve F (SRS), plasebo ve sülforafan ile tedavi edilen katılımcılar için tüm zaman noktalarında toplam puanlardaki değişiklikleri gösterir. Tüm değişiklikler, her bir katılımcı için 0 zamanındaki başlangıç ​​değerlerinden hesaplandı (tarama ve kayıt sırasında elde edilen iki değerin ortalaması).

      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı pnas.1416940111fig04.jpg
      4.
      Bireysel plasebo ve sülforafan ile tedavi edilen katılımcıların ( A ) ABC ve ( B ) SRS'si için başlangıçta ve 18 hafta sonra toplam puanları . 18 haftada, 35 için toplam ABC skorları (10 plasebo ve 25 sülforafan) ve 37 için toplam SRS skorları (11 plasebo ve 26 sülforafan) mevcuttu. Sadece sülforafan tedavisi için farklılıklar 18 haftada anlamlıydı, bu nedenle ABC ölçeğinde skorda 62.4'ten 45.0'a bir değişiklik ( A ) anlamlıydı ( P < 0.001) ve SRS'de skorda 121.5'ten 105.2'ye bir değişiklik ölçeği ( B ) anlamlıydı ( P < 0.001). Plasebo tedavisi için sırasıyla 1. ve 18. haftalarda gösterilen denekler için ortalamalar ABC ölçeğinde 62.4 ve 62.6 ve SRS ölçeğinde 121.5 ve 117.5 idi. Tablo 2.

      Skorları mevcut olan 37 denek için 18 haftada Klinik Global İzlenim-İyileştirme (CGI-I) skorları
      alt puan 18 hafta/toplam denek sayısı (değerlendirilen toplam sayının yüzdesi) sonra "çok iyileşmiş" veya "çok iyileşmiş" olarak puanlanan denek sayısı
      plasebo sülforafan Fark için P *
      Genel otizm seviyesi 0/11 (%0) 0/26 (%0) -
      Sosyal etkileşim 0/11 (%0) 12/26 (%46,2) 0.007
      Anormal/anormal davranış 1/11 (%9,1) 14/26 (%53,8) 0.014
      Tekrarlayan ve basmakalıp davranış 0/11 (%0) 6/26 (%23,1) 0.15
      Sözel iletişim 0/11 (%0) 26/11 (%42.3) 0.015
      Sözsüz iletişim 1/11 (%9,1) 5/26 (%19,2) 0.65
      Hiperaktivite ve dikkatsizlik 0/11 (%0) 3/26 (%11,5) 0,54
      Endişe 0/11 (%0) 2/26 (%7,7) >0.99
      Duyusal hassasiyetler 0/11 (%0) 6/26 (%23,1) 0.15
      Kısıtlı ve dar ilgi alanları 0/11 (%0) 0/26 (%0) -
      Ayrı bir pencerede aç
      * Fisher kesin testi ile.
      ABC'nin irritabilite, letarji, stereotipi ve hiperaktivite alt ölçeklerinde ve SRS'nin farkındalık, iletişim, motivasyon ve tavırcılık alt ölçeklerinde 4, 10 ve 18 haftada sülforafana randomize edilen katılımcılar arasında önemli ölçüde daha fazla gelişme gözlendi (Şekil 3veTablolar 1ve​ve 2).2). Sülforafan tedavisini durdurduktan sonra hem ABC hem de SRS alt puanları taban çizgisine dönme eğilimindeydi.
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı pnas.1416940111fig03.jpg
      Şekil 3.
      Sinirlilik, uyuşukluk, basmakalıp ve hiperaktivite için ABC alt puanlarındaki değişiklikler. Sülforafan veya plasebo ile 4, 10 ve 18 haftalık tedaviden ve 4 haftalık tedavi edilmemiş iyileşme döneminden (22 hafta) sonra. Sülforafan ve plasebo ile tedavi edilen katılımcılar için ham, ayarlanmamış ortalama değişiklik değerleri (±SEM) gösterilmektedir. Değişiklikler, tedavinin 10. ve 18. haftalarında hem sinirlilik hem de uyuşukluk için %95 güven düzeyinde (*) önemliydi.

      18 haftada CGI-I ölçeği puanlarının alt ölçek analizinde (Tablolar 1ve​ve 2),2), sülforafan alıcılarının %46'sı (26'dan 12'si), %54'ü (26'dan 14'ü) ve %42'si (26'dan 11'i) sırasıyla sosyal etkileşim, anormal davranış ve sözlü iletişimde çok veya çok fazla gelişmiştir. plasebo alıcıları için sırasıyla %0 (11/11 ; P = 0,007), %9 (1/11; P = 0,014) ve %0 (11/11; P = 0,015) ile.

      Bazal seviyelerden 18 haftaya kadar toplam ABC ve SRS puanlarındaki bireysel değişiklikler4. Pozitif yanıt, post hoc toplam ABC ve SRS skorlarında başlangıca göre %30'luk bir düşüş olarak tanımlandı. Sülforafan alan katılımcıların yüzde otuz beşi (26 kişiden 9'u), plaseboda %0 (11'den 0'ı) (Fisher'ın kesin testi P = 0.036) ve alan katılımcıların %60'ı (25'ten 15'i) ile karşılaştırıldığında SRS'de olumlu yanıt verdi. sülforafan, plaseboda %20 (2/10) ile karşılaştırıldığında ABC üzerinde pozitif bir yanıt verdi ( P = 0.059).

      Çalışma sırasındaki klinik izlenimlerimiz, grup atamalarına kör olmasına rağmen, 40 katılımcıdan 13'ünün sosyallik ve davranış açısından, genellikle 4 hafta gözlemlenebilir şekilde gözle görülür şekilde geliştiğiydi; hepsi sülforafan alıyordu. Ailelere ve bakıcılara yapılan sorgularda, körleme kaldırılmadan önce, oğulları sülforafan alan 26 kişiden 17'si, tedavinin ilk ayında kademeli değişiklikler bildirdi ve grup atamalarını doğru bir şekilde tahmin ederken, geri kalan 9'u sülforafan kullandı ve 14 kişiden 1'i dışında tümü plasebo aldı. - iyileşmedi ve oğullarının sülforafan almadığına inandılar. Sülforafana olumlu tepkiler, (tedavi kategorisinin ifşa edilmesinden önce) gelişmiş sosyal tepki, davranışsal uyum,

      Güvenlik ve Olumsuz Olaylar.

      Sülforafan tedavisi, OSB'nin çekirdek anormal davranışlarını etkili bir şekilde iyileştirdi ve güvenli ve iyi tolere edildi ( Tablo S2 ). Özellikle, laboratuvar sonuçlarının hiçbiri herhangi bir zaman noktasında normal aralıkların dışında değildi ( Dataset S1 ). Beklenmedik bir şekilde, sülforafan grubu, plaseboya kıyasla 18 haftalık dönemde önemli ölçüde daha fazla kilo aldı (4.31'e karşı 0.31 libre, P= 0.056). Hem başlangıçta hem de çalışma sırasında sülforafan grubunda nabız hızı daha düşüktü. Deneme sırasında otuz altı advers olay kaydedildi. Sülforafan kullanan katılımcıların %12-19'unda kusma, artan saldırganlık, karın ağrısı, artan gaz, sinirlilik, kabızlık, ishal, ateş, baş ağrısı ve mevsimsel alerjilerin alevlenmesi bildirilmiştir; insidansı plasebo gruplarında aynıydı ( P > 0.10).

      İki katılımcının tek provoke edilmemiş nöbetleri vardı: biri 3 hafta sonra sülforafan üzerinde, açıklanmayan bir yakın zamanlı nöbet öyküsü ile; diğer 3 hafta tedaviyi bıraktıktan sonra ve geçmişte (1 yıldan fazla) antiepileptik ilaçlarla iyi kontrol edilen nöbet öyküsü. Otizmli hastalar nöbetlere yatkın olsalar da ( 31 , 32 ), OSB'de sülforafanın yan etkisi olarak nöbet olasılığını dışlayamayız.

      Git: TARTIŞMA

      Davranışsal sonuç ölçütleri (ABC, SRS, CGI-I) ve çalışma doktorları ve birçok ebeveyn/bakıcı tarafından maskeyi kaldırmadan önce yapılan klinik gözlemler, bu çalışmada sülforafan ile tedavi edilen katılımcıların çoğunun istatistiksel olarak anlamlı ve klinik olarak anlamlı gelişmelere sahip olduğunu göstermiştir. sülforafan ile tedavi sırasında. Bireysel ASD hastalarının yörüngelerindeki önemli gelişmeler göze çarpıyordu ve ASD'de sülforafanın daha fazla araştırılmasının umut verici olduğunu gösteriyor.

      Sülforafanla tedavi edilen ASD'nin çoğunda davranışta tutarlı ve büyük iyileşmeler gözlemlememize rağmen, bu, 13-27 yaşları arasında, ağırlıklı olarak Kafkasyalı, 4'ü tedaviyi bırakan, yalnızca 44 erkek üzerinde, tek bölgeli, sınırlı doz aralıklı bir çalışmaydı. ilk takip ziyaretinden önce çalışma. Başlangıçta uyarlanabilir veya bilişsel beceriler için özel olarak test etmemiş olsak da, kohortumuz orta ve şiddetli OSB'li ve toplam başlangıç ​​SRS ve ABC skorlarında önemli değişkenlik gösteren denekleri içeriyordu (4veTablolar 1ve​ve 2).2). OSB'nin etiyolojisi, patogenezi ve semptomatolojisindeki dikkate değer heterojenlik nedeniyle, bulgularımızın genelleştirilmesi doğrulanmayı gerektirmektedir.

      Yine de bu çalışma, OSB'nin en azından bir alt kümesinin temel patofizyolojisine ışık tutabilir. Çoğu klinik çalışma ve ilaç, OSB'nin zahmetli semptomlarını dizginlemeyi amaçlar. Buna karşılık, bu çalışma, bildiğimiz kadarıyla, ASD'nin temel biyokimyasal anormalliklerinin (oksidatif stres ve antioksidan eksikliği, elektrofil toksisitesine karşı artan duyarlılık ve iltihaplanma) yanı sıra temel klinik özellikleri hedef almak için tasarlanmış birkaç çalışmadan biriydi. sülforafan.

      Ateş sırasında davranışları düzelen OSB'li katılımcıların da sülforafana yanıt vereceği yönündeki önerimiz, çoğu OSB popülasyonuyla (%35) karşılaştırıldığında kohortumuzda ateşe yanıt verenlerin olağandışı yüksek prevalansı (%80) nedeniyle doğrulanamadı ( 33 ). OSB'de ateş sırasında davranışta görülen hızlı değişikliklerin aksine, bu çalışmada sülforafana verilen yanıtlar birkaç hafta içinde ortaya çıktı. Bu bulgu, sülforafanın, düşük performans gösteren çoklu hücre sinyal yollarında gen transkripsiyonunda artışlara neden olabileceğini düşündürmektedir ( 34 , 35). Sülforafan, tüm organizmada anormal işlevlere yol açan eksiklikleri giderecek birkaç küçük molekülden yalnızca biri olabilir. Sülforafanın hücresel düzeydeki etkilerine ilişkin daha ileri çalışmalar, eğer doğrulanırsa, OSB'de benzer altta yatan etki mekanizmalarına sahip yeni ilaçların keşfine rehberlik edebilir.

      Terapötik potansiyeline ek olarak hücresel stres yanıtının aktivasyonunun, hücreleri çevresel toksinlerden koruduğu bilinmektedir. Yakın zamanda, sülforafanın çevresel bir detoksik madde olarak etkinliğini gösterdik ( 36 ). Sülforafanın Keap1–Nrf2 sitoprotektif sinyal yolunu aktive etme kapasitesiyle birlikte ( 10 ), bu nedenle OSB'de beyin gelişimini etkileyen hem çevresel hem de endojen risk faktörlerine karşı koruma sağlayabilir ( 37 ). Olumlu güvenlik profili göz önüne alındığında, gelecekteki çalışmalar, sülforafanın OSB'nin doğum öncesi önlenmesi ve bu bozukluğu olan küçük çocukların erken tedavisi için potansiyel yararlarını ele almalıdır.

      Git: MALZEMELER VE YÖNTEMLER

      Çalışma Protokolü.

      Bu çalışma, Massachusetts General Hospital (MGH) Çocuklar için Lurie Otizm Merkezi'nde MGH ve Johns Hopkins Üniversitesi Kurumsal İnceleme Kurullarının onayı ile yürütüldü ve ClinicalTrials.gov'da ( Gıda ve İlaç İdaresi IND 113542 altında NCT 01474993 ) kaydedildi ). Yapabilen tüm katılımcılar ve ebeveynler veya bakıcılar yazılı bilgilendirilmiş onam verdi. Tüm katılımcılar otistik bozukluk kriterlerini karşıladı ( 1 ). Şubat 2011'den Temmuz 2013'e kadar kırk dört erkek ASD hastası kaydedildi. Eğitimli bir psikolog/testçi (43'te) veya DSM-4 ( 1) eğitimli bir doktor (iki katılımcı) tarafından gerçekleştirilen semptomların kontrol listesi, tarama ziyaretinde otizm tanısını doğrulamak için kullanıldı. Tüm katılımcılar, çeşitli bilişsel kapasiteye sahip CGI-S'de orta ila şiddetli otistikti ( Tablo S1 ).

      Uygunluk kriterleri, erkek cinsiyet, 13-30 yaş, eşzamanlı kronik hastalık olmaması, 1 yıl içinde aktif nöbet öyküsü olmaması ve normal karaciğer, böbrek ve tiroid fonksiyonlarını içeriyordu. Katılımcılar, çalışma sırasında varsa düzenli kullandıkları ilaçlara devam ettiler.

      Katılımcılar, MGH Araştırma Eczanesi tarafından, bilgisayar tarafından oluşturulan rastgele izin verilen üç atamalı bloklara göre plasebo veya sülforafan almak üzere görevlendirildi; ateşli hastalık sırasında davranış. Doktorlar ve çalışma personeli grup atamasına kördü. Kırk dört denek, α = 0.05 olan iki uçlu iki örnekli bir t testi kullanılarak ve SRS'deki ortalama değişiklikteki gerçek farkın 15 birim olduğu varsayılarak , SRS için birincil hipotezi test etmek için en az %80 güç sağlayacak şekilde seçildi. 16 birimlik bir SD. Bu, OSB'li erkek çocuklar ve ergenler arasında 1 yıl boyunca gözlemlenen doğal değişimin ortalama büyüklüğünün kabaca iki katıdır ( 38 ).

      Çalışma yedi ziyaretten oluşuyordu: ilk dozdan 24 saat sonra ve 4, 10 ve 18 hafta sonra tarama, randomizasyon ve tedavilerin başlangıcı. 18 haftalık ziyaretten sonra tedavi kesildi ve katılımcılar 22 haftada geri döndü. Tıbbi öykü, yaşamsal belirtileri içeren fizik muayene, advers olay bildirimi ve SRS, ABC ve CGI-I yapıldı (1). 4, 18 ve 22 haftalık ziyaretlerde hematoloji, kimya ve idrar tahlili de alındı.

      Son katılımcının takibi tamamlandıktan sonra tüm ailelerle temasa geçildi ve çalışma hakkındaki izlenimleri ve tedavi altındaki çocuklarının gelişimi istendi. Ailelere daha sonra sülforafan mı yoksa plasebo mu aldığı konusunda bilgi verildi.

      İlaç Uygulaması ve Protokol Takvimi.

      Sülforafan bakımından zengin brokoli filizi özütlerinin kapsülleri -20 °C'de tutuldu ve periyodik olarak mikrobiyolojik olarak ve sülforafan titresi için kontrol edildi ( SI Materials and Methods ) ( 8 ). Ayırt edilemeyen plasebo kapsüller, mikrokristalin selüloz içeriyordu. Sülforafan veya plasebo 18 hafta boyunca günlük olarak uygulandı. Katılımcılar vücut ağırlığına göre dozlandı: <100 lb için 50 µmol (bir kapsül) sülforafan, 101-199 lb için 100 µmol (iki kapsül) ve >200 lb için 150 µmol (üç kapsül) Plasebo alıcıları eşdeğer aldı Ağırlıklarına göre kapsül sayısı. Kapsüller, MGH Araştırma Eczanesi tarafından mühürlü şişelerde katılımcılara ev tipi bir dondurucuda tutulmaları için talimatlarla dağıtıldı.

      Davranışsal Sonuç Ölçüleri.

      ABC, ilaç etkilerini değerlendirmek için tasarlanmış ebeveyn veya bakıcı tarafından bildirilen 58 maddelik bir ankettir; her madde, 0'dan 3'e kadar artan bir şiddet ölçeğinde puanlanır ( 27 ). ABC ayrıca birkaç alt alanı da değerlendirir (sinirlilik, uyuşukluk, basmakalıp ve hiperaktivite).

      SRS, beş alt ölçeği (farkındalık, biliş, iletişim, motivasyon ve otistik tavırlar) kapsayan, ebeveyn veya bakıcı tarafından bildirilen 65 puanlık bir sosyal iletişim anketidir ( 28 ). Her bir SRS maddesi 1-4 arasında derecelendirilir; toplam puan, birincil etkinlik son noktamızdı.

      Ohio Otizm Klinik Küresel İzlenim Şiddet Ölçeği (CGI-S, ayrıca OACIS-S olarak adlandırılır ve yalnızca taramada ölçülür) ( 29 , 30 ) otistik davranışın şiddetinin klinisyen tarafından derecelendirilen bir değerlendirmesidir (1'den artan şiddet sırasına göre). 7) ve şu alt alanları içerir: küresel otizm şiddeti, sosyal etkileşim, anormal davranış, tekrarlayan veya ritüel davranışlar, sözlü ve sözsüz iletişim, hiperaktivite/dikkatsizlik, kaygı, duyusal hassasiyetler ve sınırlı/dar ilgi alanları. Ohio Otizm Klinik Küresel İzlenimleri İyileştirme Ölçeği (CGI-I veya OACIS-I) ( 29 , 30 ), bir müdahale sırasında hastanın davranışının ne kadar değiştiğine dair klinisyen tarafından derecelendirilen bir değerlendirmedir.

      İstatistiksel Değerlendirme.

      Kırk dört denek başlangıçta kaydedildi ve sülforafan tedavisine ( n = 29) veya plaseboya ( n = 15) randomize edildi; dört denek, ilk (4 haftalık) iade ziyaretinden önce çalışmaya katılmayı bıraktı. Sonuç ölçümü değerlendirmelerinin en azından bir kısmını (14 plasebo ve 26 sülforafan) tamamlayan geri kalan 40 katılımcının davranış puanları birincil sonuçlarımızda açıklanmış ve şurada gösterilmiştir:Fig. 2-4veTablolar 1ve​ve 2.2. ABC/SRS puanlarında normal dalgalanmadan kaynaklanan tesadüfi değişiklikleri telafi etmek için, bu puanları hem tarama hem de randomizasyon ziyaretlerinde elde ettik ve sonraki ABC/SRS puanlarıyla karşılaştırmak için ortalamalarını kullandık. Birincil analizimiz, ilgili ortalama tedavi öncesi değerlerinden 4, 10, 18 ve 22 haftalık bireylerin puanları arasındaki farkları kullandı. Hipotezimizin testi, başlangıçtan 18 haftaya kadar ABC ve SRS skorlarındaki değişimde ve 22 haftada başlangıca dönüşlerinde sülforafan ve plasebo tedavi grupları arasındaki farktı.

      Her sonuç, ziyaret için sabit etkiler ve rastgeleleştirme sonrası ziyaret ile tedavi grubunun etkileşimi ve yapılandırılmamış kovaryans ile rastgele katılımcıya özgü kesişimler ve eğimler ile paylaşılan temel karma etkiler genel doğrusal modelinde modellenmiştir. Tedavi için bir ana etkinin olmaması (yani, "paylaşılan bir taban çizgisi"), randomizasyondan önce örneklenen popülasyonun gerçek durumunu düzgün bir şekilde yansıtır ve ANCOVA'ya benzer bir şekilde başlangıçta herhangi bir şans farklılıklarını ayarlama avantajına sahiptir ( 39). Her takip ziyaretinde tedavi ve kontrol grupları arasındaki başlangıçtan itibaren değişiklikleri tahmin etmek için en küçük kare ortalamaların doğrusal kontrastları kullanıldı. Varsayımları göz önüne alındığında, karma model, takip kaybı olduğu sürece tarafsız olan tahminler verir ve eksik test puanları, modelin varsayımları altında gözlemlenen puanlardan tahmin edilebilir. 44 katılımcının tümünü içeren bir tedavi amaçlı analiz, benzer sonuçlara yol açtı ( SI Materyalleri ve Yöntemleri ).

      İstatistiksel analizler SAS v.9.3 yazılımı (SAS Institute) ve Stata v.11.2 (Statacorp) ile yapılmıştır.


      Git: EK MATERYAL

      Ek Dosya

      Görmek için buraya tıklayın. (265K, pdf)Ek Dosya

      Görmek için buraya tıklayın. (57K, xlsx)
      Git: TEŞEKKÜR

      Sürekli ilgilenen ve zamanlarını cömertçe ayıran katılımcılara ve ailelerine teşekkür ederiz; biyoistatistik üzerine tartışmalar için Scott Zeger; hasta testi için Jessica Helt ve Karmen Koesterer ve veri toplama için Luisa Masclans; Veri Güvenliği İzleme Kuruluna başkanlık eden ve güvenlik ve yan etkiler konusunda danışılan Ann Neumeyer; Jennifer Mullett, çalışma prosedürlerine yardımcı olduğu için; ve Christine Ferrone ve Lisa Nowinski, düzenleyici konular ve sonuç önlemleri konusunda bize tavsiyelerde bulundukları için. Veri toplama, erişim ve analiz kalitesi Quality Associates Incorporated tarafından onaylanmıştır. Çalışma, Nancy Lurie Marks Aile Vakfı, Hussman Vakfı, Lewis B. ve Dorothy Cullman Vakfı, Agnes Gund Vakfı, N of One Vakfı,

      Git: DİPNOTLAR


      Çıkar çatışması beyanı: ABD patent başvuruları Johns Hopkins Üniversitesi (mucitler KDS, PT ve AWZ) tarafından yapılmıştır. PT ve AWZ, kendilerini tüm potansiyel finansal avantajlardan vazgeçtiler. Sülforafan bakımından zengin brokoli filizi özü, ticari bir ürün değildir. Brokoli filizleri ve glukozinolatlar açısından zengin tohumlar, Johns Hopkins tarafından Brassica Protection Products LLC'ye lisanslanmıştır (PT'nin oğlu A. Talalay, CEO'dur).


      Bu makale çevrimiçi olarak www.pnas.org/lookup/suppl/doi:10.1073/pnas.1416940111/-/DCSupplemental adresinde destekleyici bilgiler içermektedir .


      Git: REFERANSLAR

      1. Amerikan Psikiyatri Birliği. Mental Bozuklukların Tanısal ve İstatistiksel El Kitabı, 4. baskı (DSM-IV) Amerikan Psikiyatri Birliği; Arlington, VA: 2000. [ Google Akademik ]
      2. Gelişimsel Yetersizlikleri İzleme Ağı Gözetim Yılı 2010 Baş Araştırmacı Hastalık Kontrol ve Önleme Merkezleri (CDC) 8 yaşındaki çocuklar arasında otizm spektrum bozukluğunun yaygınlığı—Otizm ve gelişimsel engellileri izleme ağı, 11 bölge, Amerika Birleşik Devletleri, 2010. MMWR Surveill Summ. 2014; 63 (2):1–21. [ PubMed ] [ Google Akademik ]
      3. Zhang Y, Kensler TW, Cho CG, Posner GH, Talalay P. Sülforafan ve yapısal olarak ilgili sentetik norbornil izotiyosiyanatların antikarsinojenik aktiviteleri. Proc Natl Acad Sci ABD. 1994; 91 (8):3147–3150. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      4. Zhang Y, Talalay P, Cho CG, Posner GH. Brokoli'den antikanserojenik koruyucu enzimlerin ana indükleyicisi: Yapının izolasyonu ve aydınlatılması. Proc Natl Acad Sci ABD. 1992; 89 (6):2399–2403. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      5. Talalay P. Faz 2 enzimlerinin indüklenmesiyle kansere karşı kemoproteksiyon. Biyofaktörler. 2000; 12 (1-4):5–11. [ PubMed ] [ Google Akademik ]
      6. Juge N, Mithen RF, Traka M. Sülforafan ile kemoprevensiyon için moleküler temel: Kapsamlı bir inceleme. Hücre Mol Yaşam Sci. 2007; 64 (9):1105–1127. [ PubMed ] [ Google Akademik ]
      7. Baird L, Dinkova-Kostova AT. Keap1-Nrf2 yolunun sitoprotektif rolü. Ark Toksikol. 2011; 85 (4):241–272. [ PubMed ] [ Google Akademik ]
      8. Egner PA, et al. İki brokoli filizi içeceğinden Sulforaphane'nin biyoyararlanımı: Qidong, Çin'de kısa süreli, çapraz geçişli bir klinik araştırmanın sonuçları. Kanser Önceki Res (Phila) 2011; 4 (3):384–395. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      9. Dinkova-Kostova AT. KEAP1/NRF2 yolunun aktivasyonu ve ısı şoku tepkisi için küçük moleküllerin sülfhidril reaktivitesinin rolü. Scientifica (Kahire) 2012; 2012 :606104. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      10. Kensler TW, et al. Keap1-nrf2 sinyali: sülforafan ile kanserin önlenmesi için bir hedef. En İyi Curr Chem. 2013; 329 :163–177. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      11. James SJ, et al. Otizmli çocuklarda artmış oksidatif stres ve bozulmuş metilasyon kapasitesinin metabolik biyobelirteçleri. J Clin Nutr mıyım? 2004; 80 (6):1611-1617. [ PubMed ] [ Google Akademik ]
      12. James SJ, et al. Otizmli çocuklardan elde edilen lenfoblastoid hücrelerde hücresel ve mitokondriyal glutatyon redoks dengesizliği. FASEB J. 2009; 23 (8): 2374–2383. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      13. Giulivi C, et al. Otizmde mitokondriyal disfonksiyon. JAMA. 2010; 304 (21):2389-2396. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      14. Napoli E, Wong S, Hertz-Picciotto I, Giulivi C. Otizmli çocuklardan elde edilen granülositlerde biyoenerjetik ve bozulmuş bağışıklık tepkisi eksiklikleri. Pediatri. 2014; 133 :e1405–e1410. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      15. Frackowiak J, Mazur-Kolecka B, Schanen NC, Brown WT, Wegiel J. İdiyopatik otizm ve dup(15q11.2-q13)/otizmde intranöronal N-kesik amiloid-β peptidi ve oksidatif olarak modifiye edilmiş lipidler arasındaki bağlantı. Açta Nöropatol Komün. 2013; 1 (1):61. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      16. Vargas DL, Nascimbene C, Krishnan C, Zimmerman AW, Pardo CA. Otizmli hastaların beyninde nöroglial aktivasyon ve nöroinflamasyon. Ann Neurol. 2005; 57 (1):67–81. [ PubMed ] [ Google Akademik ]
      17. Frye RE, Rossignol DA. Otizm spektrum bozukluğu ile ilişkili biyomedikal anormallikler için tedaviler. Sınır Pediatri. 2014; 2 (66)::1–8. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      18. Brose RD, et al. Küçük moleküllü terapötikler için bir mekanizma olarak stres proteomunun aktivasyonu. Hım Mol Genet. 2012; 21 (19):4237-4252. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      19. Fahey JW, Talalay P, Kensler TW. Alandan notlar: Tutumlu bir ilaç olarak “Yeşil” kemoprevensiyon. Kanser Önceki Res (Phila) 2012; 5 (2):179–188. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      20. Fahey JW, Kensler TW. Yeşil kemoprevensiyon yoluyla sağlık süresinin uzatılması. Sanal Mentor. 2013; 15 (4):311–318. [ PubMed ] [ Google Akademik ]
      21. Curran LK, et al. Otizm spektrum bozukluğu olan çocuklarda ateşle ilişkili davranışlar. Pediatri. 2007; 120 (6):e1386–e1392. [ PubMed ] [ Google Akademik ]
      22. Mehler MF, Purpura DP. Otizm, ateş, epigenetik ve locus coeruleus. Brain Res Brain Res Rev. 2009; 59 (2):388-392. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      23. Stetler RA, et al. Isı şok proteinleri: Merkezi sinir sistemindeki hücresel ve moleküler mekanizmalar. Prog Neurobiol. 2010; 92 (2):184–211. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      24. Hollander E. 2013. Otizm Spektrum Bozukluğunda İnflamasyon ve Ateşin Translasyonel Deneysel Terapötikleri: Jakuziler, Locus Coeruleus Modülasyonu ve Helmint Terapisi. Amerikan Nöropsikofarmakoloji Koleji 52. Yıllık Toplantısı (Amerikan Nöropsikofarmakoloji Koleji) 12 Aralık 2013, Hollywood, FL.
      25. Wiggins JL, et al. Otizm spektrum bozukluklarında istirahat sırasında fonksiyonel bağlantıdaki yaşa bağlı değişiklikleri tespit etmek için kendi kendini organize eden bir harita algoritması kullanmak. Beyin Araş. 2011; 1380 :187–197. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      26. Gan N, et al. Sulforaphane, ısı şoku tepkisini aktive eder ve Hsp27'nin yukarı regülasyonu yoluyla proteazom aktivitesini arttırır. J Biol Chem. 2010; 285 (46):35528–35536. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      27. Marshburn EC, Aman MG. Zihinsel engelli çocuklardan oluşan bir topluluk örneğinde anormal davranış kontrol listesi için faktör geçerliliği ve normları. J Otizm Dev Bozukluğu. 1992; 22 (3):357-373. [ PubMed ] [ Google Akademik ]
      28. Constantino JN, et al. Otistik özelliklerin kısa bir niceliksel ölçüsünün doğrulanması: Sosyal duyarlılık ölçeğinin otizm teşhisi görüşmesi ile gözden geçirilmiş ile karşılaştırılması. J Otizm Dev Bozukluğu. 2003; 33 (4):427–433. [ PubMed ] [ Google Akademik ]
      29. Choque Olsson N, Bölte S. Kısa rapor: Otizmdeki değişimin “Hızlı ve (o kadar da kirli olmayan)” değerlendirmesi: Gelişimsel Yetersizlikler CGAS ve OSU otizm CGI'sının kültürler arası güvenilirliği. J Otizm Dev Bozukluğu. 2014; 44 (7):1773–1778. [ PubMed ] [ Google Akademik ]
      30. OSU Pediatrik Psikofarmakoloji Araştırma Birimi . OSU Otizm Derecelendirme Ölçeği. Ohio Eyalet Üniversitesi; Columbus, OH: 2005. [ Google Akademik ]
      31. Deykin EY, MacMahon B. Otistik belirtileri olan çocuklarda nöbet insidansı. J Psikiyatriyim. 1979; 136 (10):1310-1312. [ PubMed ] [ Google Akademik ]
      32. Danielsson S, Gillberg IC, Billstedt E, Gillberg C, Olsson I. Otizmli genç erişkinlerde epilepsi: Çocuklukta teşhis edilen 120 kişinin prospektif toplum temelli takip çalışması. epilepsi. 2005; 46 (6):918-923. [ PubMed ] [ Google Akademik ]
      33. Mil JH. 2010. Çalıştay Raporu: Ateş ve Otizm . http://sfari.org/news-and-opinion/workshop-reports/2010/workshop-report-fever-and-autism adresinde bulunabilir . 20 Ağustos 2014'te erişildi.
      34. Hochberg Z, et al. Çocuk sağlığı, gelişimsel plastisite ve epigenetik programlama. Endocr Rev. 2011; 32 (2):159–224. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      35. Rangasamy S, D'Mello SR, Narayanan V. Epigenetik, otizm spektrumu ve nörogelişimsel bozukluklar. Nöroterapötikler. 2013; 10 (4):742–756. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      36. Egner PA, et al. Brokoli filiz içeceği ile havadaki kirleticilerin hızlı ve sürdürülebilir detoksikasyonu: Çin'de randomize bir klinik araştırmanın sonuçları. Kanser Önceki Res (Phila) 2014; 7 (8):813-823. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      37. Lyall K, Schmidt RJ, Hertz-Picciotto I. Otizm spektrum bozuklukları için anne yaşam tarzı ve çevresel risk faktörleri. Int J Epidemiol. 2014; 43 (2):443–464. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      38. Constantino JN, et al. Erkeklerde otistik sosyal bozukluğun gelişimsel seyri. Dev Psikopat. 2009; 21 (1):127–138. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      39. Liang KY, Zeger S. Ön-son tasarımlar için sürekli ve ayrık yanıtların boylamsal veri analizi. Sankhyā: Hindistan İstatistik Dergisi. 2000; 62 (1):134–148. [ Google Akademik ]


      Brokolinin faydaları nelerdir? Brokoli neye iyi gelir, nasıl tüketilmeli?

      Brokoli, insan sağlığı için çok faydalı sebzelerden birisidir; başta kanser ve kalp hastalıkları olmak üzere, diyabet gibi kronik hastalıklara yakalanma riskini azaltır. Bu şifalı sebze vücuttaki sağlıklı hücreleri ve dokuları destekleyen, oksidatif stresi azaltan, çok sayıda antioksidan içerir. Böylece bağışıklık sistemini güçlendirir, yaşlanmayı geciktirir. Vücudun toksinleri atmasına yardımcı olur. Brokoli, vücudun pH seviyelerini dengelemeye yardımcı olan alkali bir sebzedir. Çiğ ve pişmiş olarak tüketilebilir. Hafif buharlanarak hazırlanması en pratik ve ideal tüketme yöntemidir.

      İçindekiler
      • Brokoli nedir?
      • Brokolinin içerdiği besinler
      • Brokolinin faydaları
      • Brokoli suyu zayıflatır mı?
      • Hamileler brokoli tüketmeli mi?
      • Brokoli nasıl seçilmeli ve tüketilmelidir
      • Lezzetli Brokoli yemekleri
      • Brokolinin yan etkileri nelerdir?
      Brokoli nedir?
      Brokoli minyatür bir ağaç şeklinde, kalın bir saptan çıkan yeşil çiçekli başlıkları yenen faydalı bir sebzedir. İçerdiği çok miktardaki vitamin, mineral ve lifler nedeniyle süper sebzeler diye adlandırılır. Brokoli, hücre hasarını azaltan, iltihap ve enfeksiyonu önleyen özellikler sahip bir sebzedir. Kansere karşı koruyucu olduğuna dair pek çok bilimsel çalışma yapılmıştır. Turpgiller ailesinden olan brokolinin haftada en az 3 kez tüketilmesi önerilmektedir. (1) Brokolinin içerdiği besinler


      Brokoli bol miktarda C vitamini ve K vitamini içerir, ayrıca folat potasyum, manganez, demir, fosfor, kolin, selenyum ve kükürt gibi mineraller ile lif bakımından da zengindir. Brokolide, yüksek miktarda protein bulunur ayrıca içeriğinde bulunan bolca biyoaktif birleşikler (flavonoidler) onu süper gıda yapar.

      Brokoli çok sayıda vitamin içeren süper bir sebzedir

      Brokolinin faydaları
      Brokoli Kansere karşı koruyucudur
      Brokolinin içeriğinde bulunan biyoaktif bileşikler vücudun antioksidan kapasitesini arttırır, antimikrobiyal etkiler gösterir ve böbrek kanseri, prostat kanseri, idrar kesesi ve akciğer kanseri riskini azaltır. Büyümüş tümörlerin gerilemesine katkı sağlar. İçeriğinde bol miktarda folat vardır. Bu özelliği ile kolon, mide ve servikal kanserlere karşı koruyucudur. Brokoli de bulunan bir bileşik olan sülforafan vücuttan ekstra östrojeni uzaklaştırmasıyla özellikle göğüs, rahim ve kolon kanseri için yararlıdır. (2)

      Kemik ve diş sağlığını güçlendirir.
      K vitamini, kalsiyum, magnezyum, çinko ve fosfor açısından zengin olduğu için kemik ve dişleri güçlü tutar. İçerdiği C vitamini, kalsiyum kemferol ve periodontal, dişler sağlığını olumlu etkiler. Yeterli miktarda K vitamini tüketmek kalsiyum emilimini artırır ve kemik sağlığını iyileştirir. Bir fincan kıyılmış brokoli günlük K vitamini ihtiyacın tamamını ve günlük kalsiyum ihtiyacının yarısını sağlar. Sülforafanın dejeneratif eklem rahatsızlığı osteoartrit (kireçlenme) hastalığını yavaşlattığı ve hatta gerilettiğini, kan şekerinin damarlarda ve dokularda yol açtığı hasarları azalttığını gösteren bilimsel çalışmalar vardır. Brokoli sindirim sistemini güçlendirir

      Brokoli gibi doğal lifli besinler yiyecekleri tüketmek, bağırsak sağlığını destekler, kabızlığı önler. İnsülin duyarlılığını arttırır ve kolon kanseri riskini azaltır. Ayrıca bağışıklık sistemini korur ve iltihaplanmayı önler. Lif, safra ve dışkı yoluyla günlük toksin atılımını düzenler. Brokoli sindirim sistemini güçlendiren pek çok mineral içerir. Brokoli içinde bulunan magnezyum ve vitaminler asitliği iyileştirir, besinlerin uygun sindirimi ve emilimini kolaylaştırır, iltihabı azaltarak mideyi rahatlatır. Brokolide bulunan kemferol bileşiği bağırsaklarda sağlıklı bakteri düzeylerini korumaya ve mide astarını sağlıklı tutmaya yardımcı olur. (3)

      Brokoli kalp sağlığını korur
      Brokolide bulunan antioksidanlar genel kalp krizi riskini azaltır ve kalp sağlığını destekler. Sülforafan ve glukorafanin bileşikleri bağırsaktaki safra asitlerine bağlanarak kötü kolesterol (LDL) seviyelerini azaltır ve kalbin normal çalışmasına destek olur. Yükselmiş, “kötü” kolesterol ve trigliserit düzeylerinin kalp hastalığı için yarattığı olumsuz risk faktörlerinin önlenmesinde etkindir. İçerdiği bol miktarda potasyum ve C vitamini oksijen yetersizliğine bağlı oluşan kalp rahatsızlıklarını önlemeye yardımcı olur.

      Kan şekerini düzenler, anemiyi önler
      İçeriğinde bol miktarda krom bulunan brokoli, sağlıklı insülin salımına yardımcı olur ve böylece kan şekeri kontrolünü düzenler. Brokoli filizlerinin tip 2 diyabet hastalarda insülin dengesini düzenlediği ileri sürülmüştür. Brokolide bulunan, kükürt ve amino asitler kanı temizler ve ürik asit gibi serbest radikaller ile toksinlerin atılmasına yardımcı olur. Brokoli, kan dolaşımını rahatlatır ve libidoyu yükseltir. Demir ve protein açısından zengin olan brokoli anemi gelişimini önler ve anemi sorunu olanlar için çok faydalıdır. (4)


      Brokoli bağışıklık sistemini güçlendirir
      Brokoli gibi faydalı sebzelerden günde bir porsiyon tüketiminin yaşlanmayı yavaşlattığı ve bununla ile ilişkili zihinsel gerilemeyi önlediği bazı bilimsel araştırmalarda ileri sürülmüştür. Brokoli, içinde bulunan kuersetin, bağışıklık sistemini güçlendirir. Sülforafan da yaşlanma sürecini yavaşlatır.

      Brokoli göz sağlığını korur
      Brokolide bulunan bileşik ve vitaminler göz sağlık için çok faydalıdır. Lutein ve zeaksantin yaşa bağlı göz rahatsızlıklarının önlenmesi ile ilişkilidir. A vitamini eksikliği gece körlüğüne neden olabilir. Brokoli vücutta A vitamini haline dönüştürülen beta-karoten içerir. Bu maddeler, gözlerin maküler dejenerasyonu ve kataraktlara karşı korunmasını sağlar. Yapılan bir araştırma brokoli’nin beta-karoten bakımından zengin içeriğinin Amyotrofik Lateral Sklerozun (ALS) hastalığına yakalanma olasılığını azalttığını göstermiştir. (5)

      Brokoli cilt sağlığını korur ve cildi gençleştirir
      Bol miktarda C vitamini içeren Brokoli, bağışıklık sistemi destekler ve alerji belirtilerini önler. C vitamini, cilt için ana destek sistemi olan kolajen oluşumunda gereklidir. Brokoli içerisindeki biyoaktif bileşikleri cilt kanserine yol açan UV radyasyon hasarına karşı koruyucudur. A ve C vitaminleri sağlıklı saçlar için gereken vitaminlerdir. Bir fincan brokoli günlük C vitaminin ihtiyacının %84’ünü karşılar.

      Brokoli suyu zayıflatır mı?
      Brokoli suyu metabolizmayı hızlandırır, sindirim ve boşaltım sistemini canlandırır. Haşlanmış brokoli suyu içildiğinde iştahı kapar. Brokoli suyunun yapılışı şöyledir; Yarım kilo brokoliyi dallarına ayırarak yıkadıktan sonra derin bir tencerenin içine üzerini hafif geçecek şekilde su ilave ederek en fazla 5 dakika boyunca kaynatmaya bırakın. Brokoli suyunu sabah için.

      Hamileler brokoli tüketmeli mi?
      Brokoli, hamile kadınlar için gerekli olan proteinler, kalsiyum, vitaminler, antioksidanlar, demir ve fosfor içerir. Kolin içeriği, folik asit eksikliği olan gebe kadınlar için önemli bir problem olan doğum kusurlarının önlenmesini sağlar. Bazı çalışmalar annenin yediği brokolinin bebeğin daha sağlıklı bilişsel gelişimini desteklediğini göstermiştir. Lif açısından zengin olduğu için hamilelik sırasında çok yaygın olan kabızlığın gelişmesini önler. Folat ve C vitaminiyle birlikte doğurganlığı ve sperm sayısını artırır. (6)

      Brokoli nasıl seçilmeli ve tüketilmelidir
      Brokoli seçerken parlak yeşil mor kafaları, kompakt çiçek kümeleri ve sıkı sapları olan demetleri tercih edin. Brokoliyi saklamak isterseniz, yıkanmamış kafalarını silmeniz ve kâğıt havlulara sarmanız önerilir. En fazla 2-3 gün boyunca soğutabilirsiniz. Brokoliyi yemeden önce iyice temizlemek için sirkeli suda 10 dk bekletip bol suyla durulayın. Brokoli, pişmiş veya çiğ olarak yenebilir, ikisi de sağlıklıdır fakat farklı pişirme yöntemleri sebzenin besin değerini azaltabilir. Besin değerini koruması için 5 dakikadan fazla bişirmeyin ve buharda pişirmeyi tercih edin. Buğulanmış brokolinin kolesterol seviyesini düşür ama maksimum fayda için bu değerli sebzeyi çiğ tüketmeye çalışın. Başka bir çalışma brokoli filizlerinde bulunan bileşiklerin tümör hücrelerinin büyümesini yavaşlatma etkisini arttırmak için mide hassasiyeti bulunmuyorsa çiğ tüketimini önermektedir. Kızartma olarak tavsiye edilmez çünkü besin değerlerinin yarısı kaybolabilir. Çiğ brokoli hafif acı bir tada sahiptir. Belirli bir reseptör genine sahip olan insanlar, bazı lezzetlere karşı hassastırlar ve bu nedenle son derece acı ve tatsız bulabilirler.

      Lezzetli Brokoli yemekleri
      Brokoli Çorbası nasıl yapılır?
      Malzemeler
      • Yarım kilo brokoli
      • 1 adet havuç, orta boy patates ve soğan
      • 2 su bardağı süt
      • 2 yemek kaşığı süt kreması ve tereyağı
      • 1 yemek kaşığı un, Tuz ve karabiber

      Yapılışı: 1.Temizlenip yıkanan brokoliyi, küp küp doğranan patatesi, dilimlenen havucu ve 4 parçaya böldüğünüz soğanı bir tencereye koyup üzerine su ilave edip sebzeleri haşlayın. 2.Beşamel sos için başka bir tencerede tereyağını eritip unu ekleyerek kavurun ve üzerine yavaş yavaş süt ilave ederek karıştırın. 3.Yumuşayan sebzeleri ve haşlama suyunun yarısını hazırlanan beşamel sosu üzerine ekleyerek blender ile ezin. Koyu olursa kalan haşlama suyuyla kıvamını ayarlayın. 4.Tuz ve karabiber ekleyerek 3-4 dk kaynatın. 5.Çorbaya süt kremasını ekleyip biraz daha kaynatın.

      Brokoli Çorbası düşük kalorili ve çok besleyicidir

      NOT: Besin değerlerini kaybetmemeleri için sebzeleri eleğe koyup su kaynattığınız tencereye yerleştirerek buharda pişirebilirsiniz.

      Brokoli yemeği nasıl yapılır?
      Malzemeler
      • Yarım kilo brokoli
      • 1 adet kuru soğan patates ve havuç
      • 1/2 çay bardağı zeytinyağı
      • 1 yemek kaşığı domates ve biber salçası
      • 1 tutam nane ve Tuz
      Yapılışı: 1.Tencereye zeytinyağı döküp ince ince doğradığınız kuru soğanları pembeleşinceye kadar kavurun. 2.Havuçları ve patatesleri küp küp doğrayıp tencereye ekleyerek soğanla birlikte kavurmaya devam edin. 3.Salçaları ve nane ile tuzu ekleyin. 4.Üstlerini biraz geçecek kadar sıcak su ekleyip 10 dk pişmeye bırakın. 5.Yıkayıp doğradığınız brokolileri de ekleyip tencerenin kapağını kapatarak kısık ateşte tüm sebzeler yumuşayana kadar 10-15 dk daha pişirmeye devam edin.

      Avokadolu Brokoli salatası nasıl yapılır?
      Malzemeler
      • Yarım kilo brokoli
      • 1 adet avokado
      • 3-4 kaşık zeytinyağı
      • 1-2 diş sarımsak
      • Yarım limon ve Tuz
      Brokoli ile pek çok yemek yemek yapılabilir

      Yapılışı: 1. Brokoliyi haşlayın. 2. Avokadonun kabuklarını soyup üzerine 1 yemek kaşığı zeytinyağı ekleyerek çatalla ezin. 3. Haşlanan brokolinin üzerine hazırladığınız avokadoyu dökün. 4. Limon suyunu, ezilen sarımsakları, kalan yağı ve tuzu bir kapta karıştırıp avokadolu brokolinin üzerine ekleyip karıştırın.

      Brokolinin yan etkileri nelerdir?
      • Kan inceltici (varfarin) ve coumadin kullananlar brokoli tüketmeden doktora danışmalı
      • Brokoli aşırı tüketilirse tiroit sorunu olanların durumunu olumsuz etkileyebilir. Tiroid yetmezliği (hipotiroitzm) olan kişiler kesinlikle tüketmemelidir. (7)
      • Aşırı brokoli tüketen kişiler iyot değeri yüksek besinler tüketip dengeyi sağlamalıdır.
      • Eğer ishalseniz brokoli gibi yüksek lif içeren gıdalara bir süre ara vermelisiniz.
      • Günde 50 gramdan fazla brokoli yemenin yan etkileri olabilir. En sık rastlanan yan etkileri; gaz, mide ekşimesi, deri döküntüleri ve alerjidir.
      Kaynaklar ve Referanslar:

      1- Broccoli and breast cancer2- Frozen Broccoli3- Sesame Noodles with Broccoli

      Yorum yap


      • #4
        NQO1'in kanser tedavisindeki etkileri

        Eun-Taex Oh 1, 2 ve Heon Joo Park 2, 3, *
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
        Git: Soyut


        Zorunlu bir iki elektronlu redüktaz olan NAD(P)H:kinon oksidoredüktaz (NQO1), kinon substratlarının indirgenmesini katalize eden her yerde bulunan bir sitozolik enzimdir. NQO1 aracılı kinonların iki elektronlu indirgenmesi, hedef kinonlara bağlı olarak ya kemoproteksiyon/detoksifikasyon ya da bir kemoterapötik tepki olabilir. Toksik kinonlar NQO1 tarafından indirgendiğinde glutatyon veya glukuronik asit ile konjuge olurlar ve hücrelerden atılırlar. NQO1'in bu koruyucu etkisine dayanarak, NQO1 ekspresyonunu indüklemek için diyet bileşiklerinin kullanımı, kanserin önlenmesi için umut verici bir strateji olarak ortaya çıkmıştır. Öte yandan, NQO1 aracılı iki elektronlu indirgeme, belirli kinon bileşiklerini (mitomisin C, E09, RH1 ve β-lapachone gibi) sitotoksik ajanlara dönüştürerek hücre ölümüne yol açar. NQO1'in meme, kolon, serviks, akciğer ve pankreas dahil olmak üzere birçok insan kanserinde normal dokulara kıyasla yüksek seviyelerde eksprese edildiği bilinmektedir. Bu, tümörlerin sitotoksik kinon ilaçları tarafından normal dokuya göre tercihen hasar görebileceği anlamına gelir. Önemli olarak, NQO1'in, p53 ve p33ING1b dahil olmak üzere birçok proteini, proteazomal bozulmalarını inhibe ederek stabilize ettiği gösterilmiştir. Bu derleme, NQO1'in kanser tedavisindeki biyolojik rollerini, son bulgulara ve NQO1'in kanser tedavisi için terapötik bir hedef olma potansiyeline vurgu yaparak özetleyecektir. [BMB Raporları 2015; 48(11): 609-617] NQO1'in, p53 ve p33ING1b dahil olmak üzere birçok proteini, proteazomal bozulmalarını engelleyerek stabilize ettiği gösterilmiştir. Bu derleme, NQO1'in kanser tedavisindeki biyolojik rollerini, son bulgulara ve NQO1'in kanser tedavisi için terapötik bir hedef olma potansiyeline vurgu yaparak özetleyecektir. [BMB Raporları 2015; 48(11): 609-617] NQO1'in, p53 ve p33ING1b dahil olmak üzere birçok proteini, proteazomal bozulmalarını engelleyerek stabilize ettiği gösterilmiştir. Bu derleme, NQO1'in kanser tedavisindeki biyolojik rollerini, son bulgulara ve NQO1'in kanser tedavisi için terapötik bir hedef olma potansiyeline vurgu yaparak özetleyecektir. [BMB Raporları 2015; 48(11): 609-617]

        Anahtar Kelimeler: NQO1, Kanser önleme, Kanser tedavisi
        Git: GİRİŞ


        NQO1 (NAD(P)H:kinon oksidoredüktaz 1), DT-diaforaz (EC 1.6.99.2) (1) olarak da bilinen bir sitozolik flavoenzimdir . NQO1, çeşitli dokularda eksprese edilir ve gen ekspresyonu, hem normal durumda hem de oksidatif stres koşulları sırasında ARE (antioksidan yanıt elemanı) tarafından düzenlenir (2) . NQO1 geni, promotör bölgesinde ARE içerir ve nükleer faktör (eritroid kaynaklı) benzeri 2 (Nrf2) (3) tarafından düzenlenir . NQO1 geninin, antioksidanlara, iyonize radyasyona, ksenobiyotiklere, ısı şokuna yanıt olarak GST (glutatyon S-transferaz) ve HO-1 (heme oksijenaz) gibi diğer Nrf2 kaynaklı detoksifiye edici enzim genleri ile birlikte aktive olduğu gösterilmiştir. elektrofiller, hipoksi ve ağır metaller (1 ,4) .

        NQO1'in katalitik enzim özellikleri ilk olarak 1958'de Ernster ve Navazio tarafından rapor edilmiştir (5) . NQO1, bir antikanser enzimi olarak kabul edilir, çünkü kinonların bir elektron indirgemesinden semikinon serbest radikallerine ve ROS'a (reaktif oksijen türleri) girmesini engelleyerek hücreleri oksidatif streslerden korur (6 , 7) . Bu nedenle, NQO1 ekspresyonunu indüklemek için diyet bileşiklerinin kullanımı, kanserin önlenmesi için umut verici bir strateji olarak ortaya çıkmıştır (8 , 9) . Son çalışmalar, NQO1 aktivitesinin akciğer kanseri (6 , 7 , 10 , 11) veya diğer organ kanseri (12 ) riskleri ile ilişkili olduğunu ortaya koymuştur., 13) . Çeşitli insan kanserlerinin gelişiminin NQO1 polimorfizmlerine bağlı olduğu gösterilmiştir (14 - 18) . Yakın zamanda yapılan meta-analiz çalışmaları, kromozom bölgesi 16q22 üzerinde bulunan insanı temsil eden katalitik mutasyona uğramış NOQ1 geninde (C609T) sitozinin timidin (609C > T) ile değiştirilmesinin, prolin için serin ikamesini ifade ettiğini ve böylece NQO1 enzim aktivitesini azalttığını göstermiştir, çeşitli insan kanserlerinin gelişmesine yol açar (11 , 16 - 21 ) .

        Düşük veya eksik NQO1 aktivitesi, insan kanserlerinin gelişimine karşı artan duyarlılıkla ilişkili olmasına rağmen (11 , 21) , çok sayıda çalışma NQO1'in meme kanseri, pankreas kanseri, kolorektal kanser, kolanjiokarsinom, rahim gibi bir dizi kanserde yukarı doğru düzenlendiğini bulmuştur. rahim ağzı kanseri, melanom ve akciğer kanseri (22 , 23) . Meme, kolorektal ve servikal kanserlerde, NQO1'in yüksek düzeyde ekspresyonunun, hastalığın geç klinik evresi, zayıf farklılaşma ve lenf nodu metastazı ile ilişkili olduğu bulundu (22 , 23 ). Tutarlı bir şekilde, yüksek NQO1 ekspresyon seviyelerine sahip meme ve serviks kanseri hastaları, daha düşük NQO1 ekspresyonu olan hastalara kıyasla daha düşük DFS (Hastalıksız Sağkalım) ve 5 yıllık OS (Genel Sağkalım) oranları göstermektedir (22 , 23) . Ek olarak, birçok kanserde NQO1 aktivitesi, komşu normal dokulardakinden önemli ölçüde yüksektir ( 1 , 24-26 ) .

        İndirgeyici kofaktör olarak NADH veya NADPH kullanarak iki elektronu transfer etme benzersiz özelliği ile NQO1, doğal ve eksojen kinonları ve kininiminleri toksik olan hidrokinonlara katalize eder
        (27 - 29) . Buna göre, spesifik olarak NQO1 tarafından aktive edilen ve dolayısıyla kanser hücreleri için tercihen toksik olan mitomisin C, E09, RH1, β-lapachone ve 17AAG gibi biyo-redüktif antikanser ilaçları geliştirmek için önemli çabalar olmuştur (30 - 38) . Önemli olarak, iyonlaştırıcı radyasyon (2-4Gy) (1 , 38 - 40) , sisplatin (1) veya hipertermi (41-42℃) (41 , 42) bildirilmiştir.çeşitli insan ve hayvan kanser hücrelerinde NQO1 ekspresyon seviyelerini arttırdı ve hücreleri hem in vitro hem de in vivo olarak β-lapakon'a duyarlı hale getirdi .

        Son zamanlarda ortaya çıkan çalışmalar, enzimatik aktivitelerinden bağımsız olarak NQO1'in koruyucu rollerini ortaya çıkarmıştır
        (43) . NQO1, önemli tümör baskılayıcı p53'e yapısal olarak bağlanır ve proteazomal bozulmayı önleyerek protein stabilitesini arttırır (43) . Ayrıca, NQO1'in p33, p73, p33ING1b ve C/EBPa (44 - 48) gibi diğer proteinlerin protein stabilitesini düzenlediği görülmektedir .

        Bu çalışmalar, NQO1'in çok işlevli bir antioksidan enzim ve tümörijenik ilerlemede ikili bir işleve katkıda bulunan son derece çok yönlü bir sitoprotektör olduğunu ileri sürdü. Bu derleme, NQO1'in kanserdeki biyolojik önemini, son bulgulara vurgu yaparak ve NQO1'in kanser tedavisi için terapötik bir hedef olarak potansiyelini açıklayacaktır.


        Git: NQO1 VE KANSER ÖNLEMENİN BİYOKİMYASAL ÖZELLİKLERİ


        Kanser gelişimini önlemenin bir yolu, kanserojen metabolik aktivasyonun baskılanması ve nihai kanserojenlerin üretiminin önlenmesidir
        (49) . Son araştırmalar, GST, HO-1 ve NQO1 gibi faz II enzimlerinin uyarılmasının, hayvan modellerinde, başlangıç ​​aşamalarının yanı sıra ilerleme sırasında da kimyasal aracılı tümör oluşumuna karşı inhibisyonla ilişkili olduğunu göstermiştir (8 , 49) . Faz II enzimleri arasında, NQO1, karsinojenezi önlemedeki etkisi nedeniyle en kapsamlı şekilde incelenmiştir (8 , 50) . NQO1'in kanserin ilerlemesine ve başlamasına karşı korumadaki çoklu ve genel biyokimyasal rolleri, aşağıdaki dört kategoride özetlenebilir (1): (i) iki elektronlu indirgeme ile kinon substratlarının detoksifikasyonu; (ii) SOD'nin (süperoksit anyon radikallerinin) temizlenmesi; (iii) ubikinon ve a-tokoferol gibi endojen antioksidanların bakımı; ve (iv) baskılayıcı p53/p73/p33 proteinlerinin stabilizasyonu.

        Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: BMB-48-609-g001.jpg
        1.
        NQO1'in kanser gelişimine karşı korumada biyokimyasal çoklu ve genel rolleri. NQO1 ile kinonların detoksifikasyonu


        Sıçan, zebra balığı, fare ve insan dahil olmak üzere çeşitli türlerde NQO1, bir homodimerik flavoprotein olarak iyi bilinir (2 , 51 , 52) . NQO1'in en iyi tanımlanmış ve yaygın olarak kabul edilen işlevi, adından da anlaşılacağı gibi kinonların indirgenmesidir (2) . Endojen ve çevresel kinonlar, kanserleri ve nörodejeneratif hastalıkları indükleyebilen oldukça reaktif moleküllerdir (53) . NQO1, kinonların hidrokinonlara zorunlu tek adımlı iki elektron indirgenmesini katalize eder. Daha sonra hidrokinonlar konjugasyon reaksiyonlarına (örneğin, glukuronidasyon) uğrayabilir. Sonuç olarak vücuttan kolayca atılırlar (2 , 50). NQO1 tarafından katalize edilen iki elektronlu indirgeme aktivitesi, redoks döngüsü ile serbest radikallerin oluşmasını engellediği için hücreye faydalıdır (54) . Böylece, redoks döngülü kinonların NQO1 tarafından detoksifikasyonu, hücreleri oksidatif streslerden korur ve karsinojenezi önler (55 , 49) . Örneğin, menadionun NQO1 aracılı indirgenmesi, kolaylıkla konjuge edilecek ve vücuttan atılacak kararlı hidrokinon oluşumunu üretir (53) . Kinonların bu NQO1 aracılı iki elektronlu indirgenmesi, sitokrom P450 (50 , 56 , 57) gibi diğer enzimler tarafından istenmeyen tek elektron indirgenmesinin üretimini engeller. . Oksidoredüktaz fonksiyonlarının, NADH ve FAD kofaktörleri arasında ve FADH2'den kinon substratına (50 , 53) bir hidrit transfekti içermesi önerilmiştir . NQO1, kinonlar, diklorofenolindolfenol, kinon-iminler, metilen mavisi, glutatyonil ikameli naftokinonlar ve ayrıca azo ve nitro bileşikleri de dahil olmak üzere çok geniş bir substrat yelpazesini azaltabilir (53 , 56) . NQO1, iki elektronlu indirgemeye ek olarak, nitro bileşikleri ve azo boyaların dört elektronlu indirgemesini de gerçekleştirebilir (58) . NQO1'in çeşitli kinonların toksisitesini ve kanserojenliğini azaltma yeteneği başka yerlerde kapsamlı bir şekilde gözden geçirilmiştir (59 , 60) .

        Süperoksit anyon radikallerinin temizleyicisi olarak NQO1

        Son çalışmalar, NQO1'in NAD(P)H'ye bağlı bir şekilde doğrudan süperoksitleri temizlediğini göstermiştir
        (27 , 50) . Bu koruyucu etki, NQO1'in yüksek oranda eksprese edildiği damar sistemi ve miyokard gibi belirli dokular için önemli olabilir (27 , 61 , 62 ) . Kardiyovasküler dokularda, yüksek NQO1 enzim aktivitesi, ksantin oksidaz, NAD(P)H oksidazlar, mitokondri ve bağlanmamış NOS'ler dahil olmak üzere çeşitli kaynaklar tarafından üretilen süperoksit anyon radikallerinin detoksifikasyon reaksiyonunda düşük kardiyovasküler süperoksit dismutaz ekspresyonunu telafi eder. (nitrik oksit sentazları) kardiyovasküler dokularda (61).

        Bir antioksidan enzim olarak NQO1

        NQO1'in belirli endojen antioksidanları indirgenmiş ve aktif formlarında koruduğu bilinmektedir
        (50) . E vitamini (α-tokoferol) tarafından üretilen α-tokoferolkinonun oksidasyonu, α-tokoferolhidrokinona indirgendikten sonra antioksidan özelliklere sahiptir (53) . NQO1, α-tokoferolkinonun hidrokinon formuna iki elektronlu indirgenmesini katalize eder ve bu daha sonra membranların lipid peroksidasyonuna karşı koruma sağlar (61) . Ayrıca, NQO1, ubiquinone analoglarının (koenzim Q) lipozomlardaki ubiquinol formlarına indirgenmesini katalize eder (53) . Bununla birlikte, yukarıdaki iki elektronlu indirgeme reaksiyonlarının in vivo rolü açıklığa kavuşturulmamıştır.


        Protein stabilizatörü olarak NQO1

        Tümör oluşumunun baskılanması ile ilgili kritik transkripsiyon faktörlerinden biri olan tümör baskılayıcı p53, DNA hasarı gibi streslere yanıt olarak ya büyümenin durdurulmasını ya da apoptozu indükler
        (43) . p53 proteini, yarı ömrünü etkileyen modifikasyonlar ve etkileşimler yoluyla düzenlenir (44) . Normal koşullar altında, p53 proteini, ubiquitination ve proteasomal degradasyonu indükleyen Mdm-2 ile etkileşimi nedeniyle hızla bozulur (44) . Pro-apoptotik stresler, p53 ve Mdm-2 proteinleri arasındaki bu etkileşimi bozarak p53'ün birikmesine izin verir (63) . NQO1'in tümör baskılayıcı p53 proteinini stabilize ettiği gösterilmiştir (43). NQO1 ekspresyonu, stres koşulları altında kanser hücrelerinde yukarı doğru düzenlendiğinde, NQO1, proteazomal bozulmasını inhibe ederek p53'ü stabilize eder. Bu etki, güçlü NQO1 inhibitörü dikumarol ve ayrıca NAD(P)H (43) ile rekabet eden diğer inhibitörler tarafından tersine çevrilmiştir . Dikumarolün bu etkisi, NQO1 ve p53 proteinleri arasındaki etkileşimi engelleyen NQO1'deki yapısal bir değişikliği etkilediğini düşündürmektedir (45 , 46) .. NQO1 aktivitesinin p53'ü stabilize ettiği kesin mekanizma tam olarak anlaşılmasa da, p53'ün NQO1 aracılı stabilizasyonu, NQO1'in karsinojeneze karşı koruyabileceği benzersiz bir ek mekanizmayı temsil eder. Ek olarak, tümör baskılayıcı proteinler p73 ve p33'ün bozunmasının ubiquitination tarafından düzenlendiği bildirilmiştir. Son zamanlarda, NQO1'in NAD(P)H varlığında p73 ve p33 bozunmasını da engelleyebildiği ve onları 20S proteazomal bozunmasından koruduğu gösterilmiştir (44 , 63) . Ayrıca, NQO1, p33ING1b ve C/EBPa gibi diğer proteinlerin degradatif kaderini düzenler gibi görünmektedir (47 , 48) .. Bu bulgu, NQO1'in spesifik proteinlerin proteazomal degradasyonunu düzenlemede bir kapı bekçisi olarak önemli bir rol oynadığını göstermektedir.

        NQO1 GENİNİN DÜZENLENMESİ VE KANSER ÖNLEME

        Kanser insidansını azaltmak için diyet bileşiklerinin veya sentetik kimyasalların kullanımı yarım yüzyıl önce kurulmuştur (8) . Çok sayıda çalışma, kemopreventif ajanların Nrf2 indükleyicileri olduğunu göstermiştir (8) . Bu nedenle, Nrf2/KEAP1/ARE sinyal yolunu indüklemek için kimyasal önleyici ajanların kullanılması, NQO1 geninin ekspresyonunun yükselmesine yol açması, kanserin önlenmesi için umut verici bir strateji olarak ortaya çıkmıştır (8 , 9) . Yolun adından da anlaşılacağı gibi, NQO1 geninin transkripsiyonu için üç ana bileşen önemlidir: (i) ARE, genlerin promotör bölgelerinde yer alan DNA konsensüs dizileri (53 , 64); (ii) lösin fermuar transkripsiyon faktörlerinden biri olan Nrf2, ARE'ye bağlanır, böylece hedef genlerin transkripsiyonunu işaret eder (43) ; (iii) Kelch benzeri ECH-ilişkili protein 1 (KEAP1), Nrf2'yi bağlar ve Cul3 bazlı ligaz (8 , 9) tarafından her yerde bulunmasını ve proteasomal bozunmasını destekler .

        NQO1 gen ekspresyonunun düzenlenmesi

        NQO1 için insan, fare ve sıçan genlerinin analizi, NQO1'in insan kromozomu üzerinde 16q22.1'de ve fare kromozomu 8'de (52 , 53 , 65 , 66) bulunduğunu gösterdi . NQO1 geni, yaklaşık 20 kb (53) uzunluğunda beş intron ve altı ekzondan oluşur . İnsan ve sıçan NQO1 kodlama dizileri (%85) (65) arasında önemli bir benzerlik vardır . İlk iki amino asit ve üçüncü amino asidin ilk nükleotidi Ekson 1 tarafından kodlanırken, kalan 272 amino asit ekson 2-6 tarafından kodlanır (53). NQO1, NQO1 geninin 5' yan bölgesinde, EpRE (elektrofil yanıt elemanı) olarak adlandırılan ARE ve AhRE olarak adlandırılan XRE (ksenobiyotik yanıt elemanı), hem bazal altında hem de sırasında olmak üzere iki farklı düzenleyici eleman tarafından düzenlenir. oksidatif stres koşulları (2 , 53) . Çeşitli antioksidanlar, H 2 O 2 ve tümör promotörleri ARE aracılı NQO1 ekspresyonunu arttırır (53 , 64) . Birçok transkripsiyon faktörü ARE, TMAnnRTGAYnnnGCRwww, in vitro tanıyabilir, bu da bunun bileşik düzenleyici DNA dizileri olduğunu gösterir (53) .. AP-1 bağlama dizileri, TGASTMAG, ARE dizilerine benzer olduğundan, Nrf1, Nrf2 ve Maf dahil olmak üzere GTGACnnnGC, AP-1 ve lösin fermuar proteinleri (bZIP), NQO1 geninin uyarılmasına katılır (53 , 67) . Wasserman ve Fah1 (68) tarafından hNQO1'in ARE aracılı düzenleme modeli önerilmiştir . ARE çekirdek dizisi (RTGAYnnn), bZIP transkripsiyon faktörleri (Jun, Fos, Fra, Nrf, Maf, Raf ve NF-E2) ile etkileşime girer (53) . Nrf2-KEAP1/ARE sinyal yolunun oksidatif ve elektrofilik streslere karşı sitoprotektif yanıtların ana düzenleyicisi olduğu bilinmektedir (69). XRE aracılı gen ekspresyonu, ligandlı aromatik hidrokarbon reseptörünü (AHR) içerir. XRE aracılı gen ekspresyonu, PAS (Per, Arnt, Sim) protein ailesi tarafından arttırılır (68) . AHR/Arnt dimeri, DNA dizileri, XRE (70) ile etkileşime girer . TCDD ve polisiklik aromatik hidrokarbonlar NQO1 gen ekspresyonunu indükler (71) . Bununla birlikte, bir çalışma8, fare hepatom hücrelerinde TCDD'nin neden olduğu insan NQO1'inin ARE aracılı olduğunu ve XRE'ye bağlı olmadığını bildirmiştir (72) .

        NQO1'i yükselterek kemoprevensiyon

        Kinonlar da dahil olmak üzere çevresel kanserojenler, ilk önce sitokrom P450 gibi faz I enzimleri aracılığıyla reaktif ara ürünlere metabolik olarak aktive edilir (8) . Hücresel düzeyde, kinon indirgeme, asetilasyon, sülfasyon ve glutatyon konjugasyonu dahil olmak üzere biyotransformasyon reaksiyonları yoluyla karsinojenlerin reaktif formlarını ortadan kaldıran rekabet eden faz II enzimleri (örneğin NQO1) mevcuttur (8) . Bu nedenle, faz I ve II enzimleri arasındaki dengeyi değiştirmek için diyet bileşiklerinin veya sentetik kimyasalların kullanılması, kanser kemoprevensiyonu için umut verici bir stratejidir ( 73-75 ) . Kemoprevensiyon stratejisi kavramı, NQO1'in Nrf2/KEAP1/ARE sinyal yolu ile indüklenen ekspresyonu ile yakından ilişkilidir (8) .. Birçok çalışma, turpgillerden sebzeler (sülforafan), yaygın olarak kullanılan bir baharat (kurkumin), yeşil çay (epigallocatechin-3-glaate), üzüm (resveratrol), kozalaklı ağaçlar (kafeik asit fenetil ester) gibi bitkilerden güçlü Nrf2 indükleyicilerinin elde edilebileceğini bildirmiştir. ve Japon yaban turpu (wasabi) (8) . Nrf2/NQO1 sinyal yolunu indükleyen bu kemopreventif doğal bileşikler sürekli olarak büyüyor ve bunlar başka yerlerde kapsamlı bir şekilde gözden geçirildi (9) . Sinyal yolu şu şekilde özetlenmiştir:İncir. 2.
        Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: BMB-48-609-g002.jpg
        incir. 2.
        Nrf2/KEAP1/ARE sinyal yolunun temsili kemopreventif ajanların neden olduğu aktivasyonu ve NQO1 geninin düzenlenmesi. NQO1 gen polimorfizmleri


        NQO1 polimorfizmlerinin kansere yatkınlığı arttırdığı bilinmektedir (6 , 7 , 10 - 18) . İnsanlarda NQO1 geninin iki tip polimorfizmi rapor edilmiştir (43) . Belirgin olanı, sitozinin NQO1 geninin timidin (609C > T) ile yer değiştirmesi olan tek bir nükleotid mutasyonudur (13 , 43) . Bu mutasyon, NQO1'in (6 , 7 , 10 - 18) amino asit dizisinin 187 pozisyonunda bir prolin ile serin ikameleri üretir . Başka bir mutasyon olan NQO1*2 proteini, proteazom tarafından hızla parçalanır (76). Ek olarak, null fenotipi veya NQO1 eksikliğinin, benzenin neoplastik ve toksik etkilerine duyarlılığı arttırdığı bildirilmiştir (43 , 77) . Çok sayıda çalışma, NQO1 polimorfizmlerinin çeşitli kanser türleri geliştirme yatkınlığı ile ilişkili olduğunu bildirmiştir. Ancak, çalışmaların çoğunda örneklem büyüklüğünün küçük olması nedeniyle sonuçlar tutarsızlık göstermiştir (16) . Düşük istatistik sorununun üstesinden gelmek için bireysel çalışmalarda az sayıda meta-analiz yapılmıştır. Bununla birlikte, bu meta-analizler, tek tek kanser bölgelerini ayrı ayrı ele almıştır (16) . Bu nedenle, NQO1 polimorfizmlerinin rolünü araştırmak için global bir meta-analiz yapılmalıdır.

        Git: KANSER TEDAVİSİ İÇİN NQO1 POTANSİYELİ


        NQO1 aktivitesinin olmaması veya düşük olması, yukarıda sunulduğu gibi çeşitli insan kanserlerinin gelişimine yatkınlıkla ilişkilendirilmiş olsa da (6 , 7 , 10 - 18) , insan kanserlerinde NQO1 ekspresyon seviyelerinin klinik önemi tam olarak açıklanmamıştır. İnsanlarda, NQO1, adrenal bez, meme, kolon, mesane, karaciğer, yumurtalık, serviks, pankreas akciğeri ve tiroid dahil olmak üzere çeşitli katı tümörlerde aşırı eksprese edilir (6 , 22 , 23 , 78 - 80). Kanserlerde, bu özellik, NQO1 tarafından biyo-indirgeyici olarak aktive edilen antikanser ilaçlarını aktive etmek için kullanılmıştır. Ek olarak, biyo-redüktif antikanser ilaçlarının etkinliğini artırmak için kanser hücrelerinde NQO1 aktivitesini indüklemek için stratejilerin geliştirilmesine artan bir ilgi vardır. NQO1 için biyo-redüktif kinon substratları


        Mitomisin C (MMC), β-lapachone ve benzokinon ansamisinler gibi biyo-redüktif antikanser ilaçları NQO1 tarafından aktive edilir. MMC, Streptomyces caespitosus'tan izole edilen kinon içeren bir antibiyotiktir. 30 yıldan fazla bir süredir MMC, göğüs, akciğer, pankreas ve mide dahil olmak üzere katı insan tümörlerinin tedavisinde kullanılmaktadır (81) . MMC'nin etki mekanizması, DNA'nın zincirler arası çapraz bağlanmasına yol açan hücre içi biyo-indirgeyici aktivasyondur (81) . MMC, NQO1 tarafından biyoaktive edildiğinden, NQO1 seviyesi, MMC duyarlılığının iyi bir göstergesidir. Spesifik olarak hipoksik ve asidik tümör mikroçevrelerinde, diğer biyo-redüktif enzim MMC'yi etkin bir şekilde aktive edebilir (82). Bu nedenle, NQO1 ekspresyon düzeyi ve NQO1 polimorfimi, MMC tedavisine verilen klinik yanıtı belirlemede önemli olmayabilir (81) . Başka bir temsili kinon, β-lapachone, lapachon ağacının (Tabeduia avellanedae) kabuğundan izole edilen doğal olarak oluşan bir orto naftokinondur (1 , 38 , 83 , 84) . NQO1 ile indüklenen β-lapachone aktivasyonu, indirgenmiş piridin nükleotitlerinin eşzamanlı oksidasyonu ile hidrojen peroksit ve süperoksit üretimi ile anti-tripanosomal, anti-fungal ve anti-bakteriyel özellikler göstermiştir (85) . Erken çalışmalar, β-lapachone'un topoizomeraz I'i inhibe edebileceğini ve böylece memeli hücrelerinde DNA onarımını engelleyebileceğini bildirdi (81) .. β-lapachone (ARQ 501) kanser tedavisi için Faz I ve II klinik deneylerinde işlenir (81) . Son olarak, geldanamisin (GA) ve 17-AAG dahil olmak üzere benzokinon ansamisinler bir kinon grubudur. Streptomyces hygroscopicus'tan izole edilen GA, RNA ve DNA replikasyonunu inhibe ederek antikanser özelliklere sahiptir (86) . GA'nın vSrc'nin aktivitesini engelleyebildiği ve cMyc'nin ekspresyonunu engelleyebildiği de bildirilmiştir (81) . Ek olarak GA, ATPaz aktivitesini (81) inhibe ederek ısı şoku proteini 90'ı (Hsp90) hedefler . GA, HER2, Raf-1, KIT, BCR-ABL gibi birçok onkojenik proteinin yanı sıra steroid hormon reseptörlerinin Hsp90 aracılı olgunlaşmasını etkili bir şekilde inhibe eder (81) .. Bu nedenle, GA ve 17-AAG ve 17-DMAG gibi analogları, çeşitli insan kanserlerinde antikanser etkisi göstermiştir. NQO1, 17-AAG'yi 17-AAG'nin hidrokinonuna dönüştürebilir. 17-AAG'nin hidrokinonu, IPI504 (Retaspimisin), 17-AAG'ye daha suda çözünür bir alternatif olarak geliştirilmiştir. IPI504, Hsp90'ı aktif olarak inhibe eder ve ana kinondan (87) belirgin şekilde daha fazla etki gösterir . Son yıllarda, 2,5-diaziridinil-3-3[hidroksimetil]-6-metil-1,4-benzokinon (RHI); 3-hidroksi-5-aziridinil-1-metil-2 [indol-4,7-dion]-prop-b-en-a-ol (EO9); ve 3,4-dihidro-2,2-dimetil-2H-naftol[1,2-b]piran-5,6-dion (p-lapachone) (83) . Biyo-indirgeyici antikanser ilaçları ile kanser tedavisinde NQO1'in düzenlenmesi


        Sitotoksik kinon antikanser ilaçları, normal koşullarda kanser hücreleri üzerindeki etkilerine göre, NQO1 enzimi yukarı regüle edildiğinde veya aşırı eksprese edildiğinde kanser hücrelerine tercihli olarak zarar verme avantajına sahip olabilir (1 , 38 , 83 , 84) . Son zamanlarda, klinik olarak ilgili dozlarda (örn., 2 Gy) iyonlaştırıcı radyasyonun kanser hücrelerinde NQO1 seviyesini önemli ölçüde yükselttiği ve hücreleri β-lapachone'a duyarlı hale getirdiği gösterilmiştir (38 , 39) .. NQO1 eksprese eden hücreler, iyonlaştırıcı radyasyon ve β-lapachone kombinasyonu ile tedavi edildiğinde, ROS ve ERK arasındaki pozitif geri besleme düzenlemesi, ER stresine yol açarak, bölünmüş Bax ve JNK aktivasyonunun mitokondriyal translokasyonunu indükler. Daha sonra mitokondriyal membran potansiyelinin azalması AIF translokasyonuna ve apoptoza yol açar (84) . Ayrıca yakın zamanda hiperterminin (örn. 41-42℃) NQO1'in enzimatik aktivitesini ve NQO1'in Hsp70 aracılı stabilizasyonunu arttırdığını ve hücreleri in vitro olarak β-lapachone'a duyarlı hale getirdiğini bildirdik (41 , 52 , 83 ). Isı şoku, ARE ve XRE gibi cis etkili elementler tarafından NQO1 ifadesini yükseltir. Isıl işlem görmüş kanser hücrelerinde NQO1 proteininin bozunması, işlem görmemiş hücrelere göre daha yavaştı. Isıtmadan sonra, Hsp70 kanser hücrelerinde NQO1 ile birlikte lokalize oldu ve birlikte çöktürüldü, bu da kanser hücrelerinde bu iki proteinin ilişkisini gösterir (83) . Ek olarak, deneysel fare tümörleri veya insan tümör ksenograftları, β-lapachone tedavisinden 24 saat önce tümörleri ısıtarak β-lapachone tedavisine belirgin şekilde duyarlı hale getirilebilir (41 , 42) . Ayrıca, sisplatin kanser hücrelerinde NQO1'i önemli ölçüde yukarı regüle eder, böylece kanser hücrelerinin β-lapakon'a duyarlılığını hem in vitro hem de in vivo olarak belirgin şekilde artırır.. Bu veriler, hipertermi veya radyoterapi gibi yerleşik kanser tedavileri ile tümörlerin lokal tedavisinin,Şekil 3, tümörlerde NQO1'i yukarı regüle edebilir ve kanser hücrelerini β-lapachone'a seçici olarak duyarlı hale getirebilir. β-lapachone'un tek başına veya diğer antikanser ilaçlarla kombinasyon halinde insan katı tümörlerine karşı fizibilitesini belirlemek için Faz I ve II klinik denemeleri yürütülmektedir (88) . β-lapachonun tümörlere verilmesini ve klinik etkinliğini iyileştirmek için araştırılmaktadır (89 - 91) .
        Bir resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: BMB-48-609-g003.jpg
        Şekil 3.
        İyonlaştırıcı radyasyon veya hiperterminin NQO1'e bağlı β-lapachone kaynaklı kanser hücresi ölümünü nasıl güçlendirdiğinin şematik modeli.
        Git: ÇÖZÜM


        NQO1'in özellikle kanser önleme ve oksidatif stresle ilişkili hastalıklardan korunma için çok yönlü sitoprotektif rolünü sergileyen kanıtlar birikmektedir. Çok sayıda çalışma, NQO1 polimorfizmlerinin çeşitli kanser türlerinin oluşumuna duyarlılıktaki rolünü bildirmiştir. Önemli olarak, bazı bileşikler NQO1'in aracılık ettiği indirgeme nedeniyle sitotoksik hale gelir. İlginç bir şekilde, NQO1, biyo-redüktif antikanser ilaçları kullanarak normal dokulara göre kanserlere tercihli olarak zarar verme fırsatı sağlamada aşırı eksprese edilir. Ayrıca, biyo-redüktif antikanser ilaçlarının etkinliğini arttırmak için kanser hücrelerinde NQO1 aktivitesini indüklemek için stratejilerin geliştirilmesine artan bir ilgi vardır.

        Git: Teşekkür


        Bu araştırma, Kore hükümeti (MSIP) (NRF-2013M2A2A7043703 ve NRF-2014R1A5A2009392) tarafından finanse edilen Kore Ulusal Araştırma Vakfı (NRF) hibesi tarafından desteklendi ve INHA ÜNİVERSİTESİ Araştırma Bursu tarafından desteklendi.

        Git: Referanslar

        1. Terai K, Dong GZ, Oh ET, et al. Cisplatin, NQO1'i yukarı regüle ederek beta-lapachonun antikanser etkisini arttırır. Antikanser İlaçlar. (2009); 20 :901–909. doi: 10.1097/CAD.0b013e328330098d. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Nioi P, Hayes JD. NAD(P)H: Kinoneoksidoredüktaz 1'in karsinojeneze karşı korumaya ve geninin Nrf2 bazik bölge lösin fermuarı ve arilhidrokarbon reseptörü bazik sarmal-ilmek-sarmal transkripsiyon faktörleri tarafından düzenlenmesine katkısı. Mutat Arş. (2004); 555 :149-171. doi: 10.1016/j.mrfmmm.2004.05.023. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        3. Kaspar JW, Jaiswal AK. Tirozin 486'nın antioksidan kaynaklı fosforilasyonu, Nrf2'nin antioksidan yanıt elemanına ve aktifleştirilmiş savunma gen ekspresyonuna bağlanmasına izin veren Bach 1'in hızlı nükleer ihracatına yol açar. J Biol Chem. (2010); 285 :153-162. doi: 10.1074/jbc.M109.040022. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Venugopal R, Jaiswal AK. Jun proteinleri ile birlikte Nrf2 ve Nrf1, antioksidan yanıt elemanı aracılı ekspresyonu ve detoksifiye edici enzimleri kodlayan genlerin koordineli indüksiyonunu düzenler. Onkogen. (1998); 17 :3145–3156. doi: 10.1038/sj.onc.1202237. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        5. Ernster L, Navazio F. Hayvan dokularında çözünür diaforaz. Acta Chem Scand. (1958); 12 :595-602. doi: 10.3891/acta.chem.scand.12-0595. [ CrossRef ] [ Google Akademik ]
        6. Schlager JJ, Powis G. Sitosilik NAD(P)H: (kinon-alıcı)oksidoredüktaz insan normal ve tümör dokusunda: sigara içimi ve alkolün etkileri. Int J Kanser. (1990); 45 :403–409. doi: 10.1002/ijc.2910450304. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        7. Peng Q, Lu Y, Lao X, et al. NQO1 Pro187Ser polimorfizmi ve meme kanseri duyarlılığı: güncellenmiş bir meta-analizden elde edilen kanıtlar. Pathol'ü teşhis edin. (2014) doi: 10.1186/1746-1596-9-100. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        8. Cornblatt BS, Ye L, Dinkova-Kostova AT, et al. Memede kemoprevensiyon için sülforafanın klinik öncesi ve klinik değerlendirmesi. Karsinojenez. (2007); 28 :1485–1490. doi: 10.1093/carcin/bgm049. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Surh YJ. Diyet fitokimyasalları ile kanser kemoprevensiyonu. Nat Rev Kanser. (2003); 3 :768–780. doi: 10.1038/nrc1189. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        10. Chen H, Lum A, Seifried A, et al. NAD(P)H:kinon oksidoredukataz 609C→T polimorfizmi ile akciğer kanseri riskinin azalması arasındaki ilişki. Kanser Araş. (1999); 59 :3045–3048. [ PubMed ] [ Google Akademik ]
        11. Lin P, Wang HJ, Lee H, et al. NAD(P)H:Taiwna'da kinon oksidoredüktaz polimorfizmi ve akciğer kanseri. J Toxicol Environ Health A. (1999); 58 :187–197. doi: 10.1080/009841099157287. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        12. Lewis SJ, Cherry NM, Niven RM, et al. NAD(P)H'deki polimorfizmler: Birleşik Krallık popülasyonunda kinon oksidoredüktaz geni ve küçük hücreli akciğer kanseri riski. Akciğer kanseri. (2001); 34 :177–183. doi: 10.1016/S0169-5002(01)00243-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        13. Song SY, Jeong SY, Park HJ, et al. Tamamen rezeke edilmiş küçük hücreli dışı akciğer kanserinde postoperatif radyasyon tedavisi sonrası NQO1 C609T polimorfizmlerinin klinik önemi. Akciğer kanseri. (2010); 68 :278–282. doi: 10.1016/j.lungcan.2009.06.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        14. Hamajima N, Matsuo K, Iwata H, et al. NAD(P)H: kinon oksidoredüktaz 1 (NQO1) C609T polimorfizmi ve Japonlar için sekiz kanser riski. Int J Clin Oncol. (2002); 7 :103–108. [ PubMed ] [ Google Akademik ]
        15. Menzel HJ, Sarmanova J, Soucek P, et al. NQO1 polimorfizminin iki bağımsız popülasyonda spontan meme kanseri ile ilişkisi. Br J Kanser. (2004); 90 :1989–1994. doi: 10.1038/sj.bjc.6601779. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        16. Lajin B, Alachkar A. NQO1 polimorfsim C609T (Pro187Ser) ve kanser duyarlılığı: kapsamlı bir meta-analiz. Br J Kanser. (2013); 109 :1325-1337. doi: 10.1038/bjc.2013.357. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        17. Fan Y, Hu D, Feng B, Wang W. NQO1 C609T polimorfizmi ve hepatoselüler karsinom riski. Tümör Biol. (2014); 35 :7343–7350. doi: 10.1007/s13277-014-1712-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        18. Cho CG, Lee SK, Nam SY, et al. GSTP1 ve NQO1 polimorfizmleri ile baş ve boyun skuamöz hücreli karsinom riski ilişkisi. J Kore Tıp Bilimi. (2006; 21 :1075–1079. doi: 10.3346/jkms.2006.21.6.1075. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        19. Zheng B, Wang Z, Chai R. NQO1 C609T polimorfizmi ve kolorektal kanser duyarlılığı: bir metaanaliz. Arch Med Sci. (2014); 10 :651–660. doi: 10.5114/aoms.2014.44856. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. Enver A, Siegel D, Kepa JK, et al. Moleküler şaperon Hsp70'in insan NAD(P)H ile etkileşimi: kinon oksidoredüktaz 1. J Biol Chem. (2002); 277 :14060–14067. doi: 10.1074/jbc.M111576200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        21. Traver RD, Horikoshi T, Danenberg KD, et al. İnsan kolon karsinomu hücrelerinde NAD(P)H:kinon oksidoredüktaz gen ekspresyonu: DT-diaforaz aktivitesini ve mitomisin duyarlılığını modüle eden bir mutasyonun karakterizasyonu. Kanser Araş. (1992); 52 :797-802. [ PubMed ] [ Google Akademik ]
        22. Ma Y, Kong J, Yan G, et al. NQO1 aşırı ekspresyonu, uterin serviksin skuamöz hücreli karsinomunda kötü prognoz ile ilişkilidir. BMC Kanser. (2014); 14 :414. doi: 10.1186/1471-2407-14-414. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        23. Yang Y, Zhang Y, Wu Q, et al. Meme kanserlerinde yüksek NQO1 ekspresyonunun klinik etkileri. J Exp Clin Cancer Arş. (2014); 33:14 . doi: 10.1186/1756-9966-33-14. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        24. Cresteil T, Jaiswal AK. NAD(P)H: kinon oksidoredüktaz (NQO1) geninin tümör hücrelerinde aynı orijinli normal hücrelere kıyasla yüksek düzeyde ekspresyonu. Biochem Pharmacol. (1991); 42 :1021-1027. doi: 10.1016/0006-2952(91)90284-C. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        25. Siegel D, Franklin WA, Ross D. NAD(P)H'nin immünohistokimyasal tespiti: insan akciğer ve akciğer tümörlerinde kinon oksidoredüktaz. Klinik Kanser Arş. (1998); 4 :2065–2070. [ PubMed ] [ Google Akademik ]
        26. Beall HD, Murphy AM, Siegel D, et al. Nikotinamid adenin dinükleotit (fosfat): biyo-redüktif antitümör kinonlar için bir hedef olarak kinon oksidoredüktaz (DT-diaforaz): insan akciğer ve meme kanseri hücre dizilerinde kinon sitotoksisitesi ve seçiciliği. Mol İlaç. (1995); 48 :499-504. [ PubMed ] [ Google Akademik ]
        27. Siegel D, Gustafson DL, Dehn DL, et al. NAD(P)H: kinon oksidoredüktaz 1: bir süperoksit süpürücü olarak rol. Mol İlaç. (2004); 65 :1238–1247. doi: 10.1124/mol.65.5.1238. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        28. Winski SL, Koutalos Y, Bentley DL, et al. NAD(P)H:kinon oksidoredukataz 1'in insan kanser hücrelerinde hücre altı lokalizasyonu. Kanser Araş. (2002); 62 :1420–1424. [ PubMed ] [ Google Akademik ]
        29. Ross D, Kepa JK, Winski SL, et al. NAD(P)H:kinon oksidoredüktaz 1 (NQO1): kemoproteksiyon, biyoaktivasyon, gen regülasyonu ve genetik polimorfizmler. Chem Biol Etkileşim. (2000); 129 :77-97. doi: 10.1016/S0009-2797(00)00199-X. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        30. Gibson NW, Hartley JA, Butler J, et al. Bir dizi aziridinil benzokinonun DT-diaforaz aracılı metabolizması ile DNA hasarı ve sitotoksisite arasındaki ilişki. Mol İlaç. (1992); 42 :531–536. [ PubMed ] [ Google Akademik ]
        31. Gustafson DL, Beall HD, Bolton EM, et al. Çin hamsteri yumurtalık hücrelerinde insan NQO1'inin (DT-diaforaz) ifadesi: antitümör kinonların toksisitesi üzerindeki etkisi. Mol İlaç. (1996); 50 :728–735. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        32. Mikami K, Naito M, Tomida A, et al. İnsan kolon ve mide karsinomu hücre hatlarında mitomisin C'ye duyarlılığın kritik bir belirleyicisi olarak DT-diaforaz. Kanser Araş. (1996); 56 :2823–2826. [ PubMed ] [ Google Akademik ]
        33. Ross D, Beall HD, Siegel D, et al. Biyo-indirgeyici ilaç aktivasyonunun enzimolojisi. Br J Kanser. (1996); 74 (ek. XXVII):S1–S8. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        34. Kelland LR, Sharp SY, Rogers PM, et al. DT-Diaphorase ekspresyonu ve bir ısı şoku proteini 90 inhibitörü olan 17-allilamino, 17-demethoxygeldanamisin'e karşı tümör hücresi duyarlılığı. J Natl Cancer Inst. (1999); 91 : 1940–1949. doi: 10.1093/jnci/91.22.1940. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        35. Winski SL, Swann E, Hargreaves RH, et al. Bir dizi stabil transfekte hücre hattında NAD(P)H:kinon oksidoredüktaz 1 (NQO1) seviyeleri ve antitümör kinonlara duyarlılık arasındaki ilişki. Biochem Pharmacol. (2001); 61 :1509–1516. doi: 10.1016/S0006-2952(01)00631-1. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        36. Loadman PM, Bibby MC, Phillips RM. Klinik olarak aktif olmayan ajan EO9 üzerinde kullanılan indol kinon biyo-indirgeyici ilaçların geliştirilmesine yönelik farmakolojik yaklaşım. Br J Pharmacol. (2002); 137 :701–709. doi: 10.1038/sj.bjp.0704916. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        37. Goetz MP, Toft D, Reid J, et al. İleri kanserli hastalarda 17-allilamino-17-demetoksigeldanamisinin Faz I denemesi. J Clin Oncol. (2005); 23 :1078-1087. doi: 10.1200/JCO.2005.09.119. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        38. Choi EK, Terai K, Ji IM, et al. NAD(P)H:Kinon Oksidoredüktaz'ın radyasyonla yukarı regülasyonu, biyo-redüktif β-lapachonun kanser hücreleri üzerindeki etkisini güçlendirir. neoplazi. (2007); 9 :634-642. doi: 10.1593/neo.07397. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        39. Park HJ, Ahn KJ, Ahn SD, et al. Kanser hücrelerinin beta-lapakon'a duyarlılığı iyonlaştırıcı radyasyonla arttırılır. Int J Radiat Oncol Biol Phys. (2005); 61 :212–219. doi: 10.1016/j.ijrobp.2004.09.018. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        40. Suzuki M, Amano M, Choi J, et al. DU-145 insan prostat kanseri hücrelerinde radyasyon ve beta-lapachonun in vitro sinerjistik etkileri. Radyat Arş. (2006); 165 :525-531. doi: 10.1667/RR3554.1. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        41. Park HJ, Choi EK, Choi J, et al. NAD(P)H'nin ısı kaynaklı yukarı regülasyonu: kinon oksidoredüktaz, beta-lapachonun antikanser etkilerini güçlendirir. Klinik Kanser Arş. (2005); 11 :8866-8871. doi: 10.1158/1078-0432.CCR-05-0818. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        42. Song CW, Chae JJ, Choi EK, et al. Biyo-indirgeyici ilaç beta-lapakonunun kanser önleyici etkisi, ısı şoku ile NQO1'i aktive ederek arttırılır. Int J Hipertermi. (2008); 24 :161–169. doi: 10.1080/02656730701781895. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        43. Dinkova-Kostova A, Talalay P. NAD(P)H:kinon alıcı oksidoredukataz 1 (NQO1), çok işlevli bir antioksidan enzim ve olağanüstü çok yönlü sitoprotektör. Arch Biochem Biophys. (2010); 501 :116–123. doi: 10.1016/j.abb.2010.03.019. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        44. Asher G, Tsvetkov P, Kahana C, et al. Tümör baskılayıcılar p53 ve p73'ün ubikuitinden bağımsız proteazomal bozunma mekanizması. Genler Dev. (2005); 19 :316-321. doi: 10.1101/gad.319905. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        45. Asher G, Lotem J, Kama R, et al. NQO1, p53'ü farklı bir yoldan stabilize eder. Proc Natl Acad Sci US A. (2001); 99 :3099–3104. doi: 10.1073/pnas.052706799. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        46. ​​Enver A, Dehn D, Siegel D, et al. İnsan NAD(P)H:Kinon Oksidoredüktaz 1'in (NQO1) hücrelerde ve hücresiz sistemlerde tümör baskılayıcı protein p53 ile etkileşimi. J Biol Chem. (20030; 278 :10368–10373. doi: 10.1074/jbc.M211981200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        47. Garate M, Wong RPC, Campos EI, et al. NAD(P)H kinon oksidoredüktaz 1, tümör baskılayıcı p33ING1b'nin proteazomal bozulmasını inhibe eder. EMBO Temsilcisi (2008); 9 :576-581. doi: 10.1038/embor.2008.48. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        48. Patrick BA, Jaiswal AK. Stres kaynaklı NQO1, kimyasal kaynaklı cilt kanserine karşı korumada etkileri olan p63 ekspresyonunu düzenlemek için 20S proteasomal bozulmasına karşı C/EBPa'nın stabilitesini kontrol eder. Onkogen. (2012); 31 :4362-4371. doi: 10.1038/onc.2011.600. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ] Geri çekildi
        49. Cuendet M, Oteham CP, Moon RC, et al. Kanser kemoprevensiyonu için bir biyobelirteç olarak kinon redüktaz indüksiyonu. J Nat Prod. (2006); 69 :460–463. doi: 10.1021/np050362q. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        50. Zhu H, Li Y. NAD(P)H:kinon oksidoredüktaz 1 ve kardiyovasküler hastalıklar ve ilgili durumlardaki potansiyel koruyucu rolü. Kardiyovasküler Toksikol. (2012); 12 :39–45. doi: 10.1007/s12012-011-9136-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        51. Williams JB, Lu AYH, Cameron RG, et al. Sıçan karaciğeri NAD(P)H:kinon redüktaz. J Biol Chem. (1986); 261 :5524–5528. [ PubMed ] [ Google Akademik ]
        52. Jaiswal AK, McBride OW, Adensik M, et al. İnsan dioksin ile indüklenebilir sitozolik NAD(P)H:kinon oksidoredüktaz. J Biol Chem. (1988); 263 :13572–13578. [ PubMed ] [ Google Akademik ]
        53. Ross D, Kepa JK, Winski SL, et al. NAD(P)H:kinon oksidoredüktaz 1 (NQO1): kemoproteksiyon, biyoaktivasyon, gen regülasyonu ve genetik polimorfizmler. Chem Biol Etkileşim. (2000); 129 :77-97. doi: 10.1016/S0009-2797(00)00199-X. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        54. Atia A, Alrawaiq N, Abdullah A. NAD(P)H:kinon oksidoredüktaz 1 (NQO1) hakkında bir inceleme; Çok fonksiyonlu bir antioksidan enzim. J Appl Eczacılık Sci. (2014); 4 :118–122. [ Google Akademik ]
        55. Nebert DW, Roe AL, Vandale SE, et al. NAD(P)H: kinon oksidoredüktaz (NQO1) polimorfizmi, benzene maruz kalma ve hastalığa yatkınlık: Büyük bir inceleme. Genet Med. (2002); 4 :62–70. doi: 10.1097/00125817-200203000-00003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        56. Lind C, Cadenas E, Hochstein P, et al. DT-diaforaz: saflaştırma özellikleri ve işlevi. Yöntemler Enzimol. (1990); 186 :287–301. [ PubMed ] [ Google Akademik ]
        57. Wefers H, Sies H. Menadion ve menadion-glutatyon konjugatının redoks döngüsü sırasında hepatik düşük seviyeli kemilüminesans: glutatyon ve NAD(P)H:kinon redüktaz (DT-diaforaz) aktivitesi ile ilişkisi. Arch Biochem Biophys. (1983); 224 :568–578. doi: 10.1016/0003-9861(83)90244-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        58. Li R, Bianchet MA, Talalay P, Amzel LM. NAD(P)H:kinon redüktazın üç boyutlu yapısı, kanser kemoproteksiyonunda ve kemoterapide yer alan bir flavoprotein: iki elektron indirgeme mekanizması. Proc Natl Acad Sci US A. (1995); 92 :8846-8850. doi: 10.1073/pnas.92.19.8846. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        59. Talalay P, Dinkova-Kostova AT. Elektrofillerin ve reaktif oksijen ara maddelerinin toksisitesine karşı korumada nikotinamid kinon oksidoredüktaz 1'in (NQO1) rolü. Met Enzimol. (2004); 382 :355–364. [ PubMed ] [ Google Akademik ]
        60. Cenas N, Anusevicius Z, Nivinskas H, et al. Kinonların iki elektronlu indirgenmesinde yapı-aktivite ilişkileri. Met Enzimol. (2004); 382 :258-277. [ PubMed ] [ Google Akademik ]
        61. Ross D. Quinone, metabolik dünyada çoklu görevleri azaltır. İlaç Metabolizması Rev. (2004); 36 :639-654. doi: 10.1081/DMR-200033465. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        62. Siegel D, Ross D. NAD(P)H'nin İmmünodeteksiyonu: insan dokularında kinon oksidoredüktaz 1 (NQO1). Serbest Radikal Bio Med. (2000); 29 :246–253. doi: 10.1016/S0891-5849(00)00310-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        63. Asher G, Bercovich Z, Tsvetkov P, et al. Ornitin dekarboksilazın 20S proteasomal bozunması NQO1 tarafından düzenlenir. Mol Hücre. (2005); 17 :645–655. doi: 10.1016/j.molcel.2005.01.020. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        64. Li Y, Jaiswal AK. Tip 1 NAD(P)H: kinon oksidoredüktaz gen ekspresyonunun insan antioksidan tepki elemanı aracılı düzenlemesi. Eur J Biochem. (1994); 226 :31–39. doi: 10.1111/j.1432-1033.1994.tb20023.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        65. Vasiliou V, Theurer MJ, Puga A, et al. Fare dioksin ile indüklenebilir NAD(P)H: menadion oksidoredüktaz: NMO1 cDNA dizisi ve mRNA seviyelerindeki genetik farklılıklar. Farmakogenetik. (1994); 4 :341–348. doi: 10.1097/00008571-199412000-00007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        66. Robertson JA, Chen H, Nebert DW. NAD(P)H: menadion oksidoredüktaz. Enzim, cDNA ve tam amino asit dizisi ve gen düzenlemesinin yeni saflaştırılması. J Biol Chem. (1986); 261 :15794–15799. [ PubMed ] [ Google Akademik ]
        67. Itoh K, Chiba T, Takahashi S, et al. Bir Nrf2:küçük Maf heterodimer, antioksidan tepki elemanları yoluyla faz II detoksifiye edici enzim genlerinin uyarılmasına aracılık eder. Biochem Biophys Res Komün. (1997); 236 :313-322. doi: 10.1006/bbrc.1997.6943. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        68. Wasserman WW, Fahl WE. Fonksiyonel antioksidan duyarlı elementler. Proc Natl Acad Sci US A. (1997); 94 :5361–5366. doi: 10.1073/pnas.94.10.5361. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        69. Li Y, Paonessa JD, Zhang Y. Nrf2'nin kimyasal aktivasyon mekanizması. PLoS Bir. (2012); 7 :e35122. doi: 10.1371/journal.pone.0035122. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        70. Landers JP, Bunce NJ. Ah reseptörü ve dioksin toksisitesinin mekanizması. Biochem J. (1991); 276 :273–287. doi: 10.1042/bj2760273. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        71. Kumaki K, Jensen NM, Shire JGM, et al. Farede sitozol azaltılmış NAD(P) indüksiyonunda genetik farklılıklar: menadion oksidoredüktaz ve mikrozomal aril hidrokarbon hidroksilaz. J Biol Chem. (1997); 252 :157–165. [ PubMed ] [ Google Akademik ]
        72. Radjendirane V, Jaiswal Antioksidan tepki elemanı aracılı 2,3,7,8-tetraklorodibenzo-p-dioksin (TCDD) insan NAD(P)H:kinon oksidoredüktaz 1 gen ekspresyonunun uyarılması. Biochem Pharmacol. (1999); 58 :1649-1655. doi: 10.1016/S0006-2952(99)00245-2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        73. Sporn MB. Kansere karşı savaş. Lancet. (1996); 347 :1377-1381. doi: 10.1016/S0140-6736(96)91015-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        74. Kensler TW. Kanserojen detoksikasyon enzimlerinin indükleyicileri tarafından kemoprevensiyon. Sağlık Perspektifi. (1997); 105 :965-970. doi: 10.1289/ehp.97105s4965. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        75. Fahey JW, Talalay P. Sülforafanın antioksidan işlevleri: Faz II detoksikasyon enzimlerinin güçlü bir indükleyicisi. Gıda Kimyasal Toksikol. (1999); 37 :973-979. doi: 10.1016/S0278-6915(99)00082-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        76. Siegel D, Anwar A, Winski SL, et al. NAD(P)H:kinon oksidoredüktaz 1'den bir mutantın hızlı poliübikinasyonu ve proteasomal bozunması. Mol Pharmacol. (2001); 59 :263–268. [ PubMed ] [ Google Akademik ]
        77. Rothman N, Smith MT, Hayes RB, et al. Hematolojik malignite için bir risk faktörü olan benzen zehirlenmesi, NQO1 609C → T mutasyonu ve klorzoksazonun hızlı fraksiyonel atılımı ile ilişkilidir. Kanser Araş. (1997); 57 :2839–2842. [ PubMed ] [ Google Akademik ]
        78. Malkinson AM, Siegel D, Forrest DL, et al. İnsan küçük hücreli olmayan akciğer karsinomunda yüksek DT-diaforaz aktivitesi ve haberci RNA içeriği: akciğer tümörü ksenograftlarının mitomisin Cl'ye yanıtıyla ilişkisi. Kanser Araş. (1992); 52 :4752-4757. [ PubMed ] [ Google Akademik ]
        79. Siegel D, Ross D. NAD(P)'nin İmmünodeteksiyonu: insan dokularında kinon oksidoredüktaz 1 (NQO1). Ücretsiz Rad Biol Med. (2000); 29 :246–253. doi: 10.1016/S0891-5849(00)00310-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        80. Kanser Genom Atlas Araştırma Ağı (TCGA) Kapsamlı genomik karakterizasyon, insan kolon ve rektum kanserini tanımlar. Doğa. (2012); 487 :330–337. doi: 10.1038/nature11252. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        81. Siegel D, Yan C, Ross D. NAD(P)H:kinon oksidoredüktaz 1 (NQO1) antitümör kinonlara karşı duyarlılık ve direnç. Biochem Pharmacol. (2012); 83 :1033-1040. doi: 10.1016/j.bcp.2011.12.017. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        82. Begleiter A, Robotham E, Leith MK. Hipoksi altında mitomisin C aktivasyonunda NAD(P)Hkinon alıcı) oksidoredüktaz (DT-diaforaz) rolü. Mol İlaç. (1992); 41 :677–682. [ PubMed ] [ Google Akademik ]
        83. Dong GZ, Youn H, Park MT, et al. Isı şoku, NQO1 gen aktivitesini artırarak ve NQO1 proteininin Hsp70 aracılı stabilizasyonu yoluyla beta-lapachone sitotoksisitesinin aracısı olan NAD(P)H:kinon oksidoredüktaz (NQO1) ekspresyonunu arttırır. Int J Hipertermi. (2009); 25 :477–487. doi: 10.1080/02656730903049836. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        84. Park MT, Song MJ, Lee H, et al. β-lapachone, kanser hücrelerinde mitokondriyal apoptoz aktivasyonuna neden olmak için iyonlaştırıcı radyasyonun etkisini önemli ölçüde artırır. PLoS Bir. (2011); 6 :e25976. doi: 10.1371/journal.pone.0025976. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        85. Boveris A, Docampo R, Turrens JF, et al. Trypanosoma cruzi'de beta-lapachonun süperoksit anyonu ve hidrojen peroksit üretimi üzerindeki etkisi. Biochem J. (1978); 175 :431-439. doi: 10.1042/bj1750431. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        86. Li LH, Clark TD, Cowie CH, et al. Geldanamisin ve türevlerinin RNA'ya yönelik DNA polimeraz üzerindeki etkileri ve Rauscher lösemi virüsünün enfektivitesi. Cancer Treat Rep (1977); 61 :815-824. [ PubMed ] [ Google Akademik ]
        87. Guo W, Reigan P, Siegel D, et al. NAD(P)H:-kinon oksidoredüktaz tarafından 17-allilamino-demetoksigeldanamisin (17-AAG) hidrokinon oluşumu 1: 17-AAG hidrokinonun ısı şoku protein 90 inhibisyonundaki rolü. Kanser Araş. (2005); 65 :10006–10015. doi: 10.1158/0008-5472.CAN-05-2029. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        88. Khong HT, Dreisbach L, Kindler HL, et al. Tedavi naif, rezeke edilemeyen pankreas adenokarsinomu olan yetişkin hastalarda gemsitabin ile kombinasyon halinde ARQ 501'in bir faz 2 çalışması. ASCO Yıllık Toplantı Tutanakları Bölüm I. . J Clin Oncol. (2007); 25 :15017. [ Google Akademik ]
        89. Blanco E, Bey EA, Dong Y, et al. Tedavi naif, rezeke edilemeyen pankreas adenokarsinomu olan yetişkin hastalarda gemsitabin ile kombinasyon halinde ARQ 501'in bir faz 2 çalışması. J Kontrol Yayını. (2007); 122 :365–374. doi: 10.1016/j.jconrel.2007.04.014. [ CrossRef ] [ Google Akademik ]
        90. Dong Y, Chin SF, Blanco E, et al. Prostat kanseri tedavisi için polimer implantlar yoluyla beta-lapachonun intratumoral verilmesi. Klinik Kanser Arş. (2009); 15 :131–139. doi: 10.1158/1078-0432.CCR-08-1691. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        91. Park C, Youn H, Kim H, et al. Bir anti-kanser ilacının hedeflenen teslimi için siklodekstrin kaplı altın nanopartiküller. J Mater Chem. (2009); 19 :2310–2315. doi: 10.1039/b816209c. [ CrossRef ] [ Google Akademik ]


        Süper besin brokoli tüm kanser türlerine karşı koruyor!

        Sofraların sevilen lezzeti brokoli kilo vermeden tutun da kemik ve diş sağlığını korumaya kadar etkili bir sebzedir. Güçlü içeriği sayesinde tüm kanser türlerine karşı koruma sağlar.Peki brokolinin faydaları nelerdir? Brokoli sağlığımızı nasıl etkiler?


        Brokoli bol miktarda C vitamini ve K vitamini içerir, ayrıca folat potasyum, manganez, demir, fosfor, kolin, selenyum ve kükürt gibi mineraller ile lif bakımından da zengindir. Brokolide, yüksek miktarda protein bulunur ayrıca içeriğinde bulunan bolca biyoaktif birleşikler (flavonoidler) onu süper gıda yapar. Brokoli çok sayıda vitamin içeren süper bir sebzedir.

        Brokoli kansere karşı koruyucudur
        Brokolinin içeriğinde bulunan biyoaktif bileşikler vücudun antioksidan kapasitesini arttırır, antimikrobiyal etkiler gösterir ve böbrek, prostat, idrar kesesi, akciğer ve rektum kanseri riskini azaltır ve büyümüş tümörlerin gerilemesine katkı sağlar. Brokolide yeterli miktarda folat (B9 vitamini) alınmasıyla, kolon, mide, pankreatik ve servikal kanserlere karşı koruma sağlamada umut vericidir. Brokoli de bulunan bir bileşik olan sülforafan vücuttan ekstra östrojeni uzaklaştırmasıyla özellikle göğüs, rahim ve kolon kanseri için yararlıdır.


        Kemik ve diş sağlığını güçlendirir
        Brokoli, K vitamini, kalsiyum, magnezyum, çinko ve fosfor açısından zengin olduğu için kemikleri ve dişleri güçlü tutar. C vitamini ve kalsiyum ve kemferol, periodontal, dişler ve onları çevreleyen dokuların olumlu etkiler. Yeterli miktarda K vitamini tüketmek kalsiyum emilimini artırır ve kemik sağlığını iyileştirir. Bir fincan kıyılmış brokoli günlük ihtiyacın tamamına ve günlük kalsiyum ihtiyacının yarıya yakınını sağlar. Ayrıca K vitamini, kolin ile birlikte biliş ve hafızayı artırmaya yardımcı olur. Sülforafanın dejeneratif eklem rahatsızlığı osteoartrit (kireçlenme) hastalığını yavaşlattığı ve hatta gerilettiğini, kan şekerinin damarlarda ve dokularda yol açtığı hasarları azalttığını gösteren bilimsel çalışmalar vardır.

        Brokoli sindirim sistemini güçlendirir
        Brokoli gibi doğal lifli besinler yiyecekleri tüketmek, bağırsak sağlığını destekler, kabızlığı önler, insülin duyarlılığını arttırır ve kolon kanseri riskini azaltır. Ayrıca bağışıklık sistemini korur ve iltihaplanmayı önlemede rol alır. Uygun lif, safra ve dışkı yoluyla günlük toksin atılımı için çok önemli olan düzenliliği destekler. Brokoli içinde bulunan magnezyum ve vitaminler asitliği iyileştirir, besinlerin uygun sindirimi ve emilimini kolaylaştırır, iltihabı azaltarak mideyi rahatlatır. Brokolide bulunan kemferol bileşiği bağırsaklarda sağlıklı bakteri düzeylerini korumaya ve mide astarını sağlıklı tutmaya yardımcı olur.

        Kalp sağlığını korur
        Brokolide bulunan antioksidanlar genel kalp krizi riskini azaltır ve kalp sağlığını destekler. Sülforafan ve glukorafanin bileşikleri bağırsaktaki safra asitlerine bağlanarak kötü kolesterol (LDL) seviyelerini azaltır ve kalbin normal çalışmasına destek olur. Yükselmiş, "kötü" kolesterol ve trigliserit düzeylerinin kalp hastalığı için yarattığı olumsuz risk faktörlerinin önlenmesinde etkindir. İçerdiği bol miktarda potasyum ve C vitamini oksijen yetersizliğine bağlı oluşan kalp rahatsızlıklarını önlemeye yardımcı olur.

        Kan şekerini düzenler, anemiyi önler
        İçeriğinde bol miktarda krom bulunan brokoli, sağlıklı insülin salımına yardımcı olur ve böylece kan şekeri kontrolünü düzenler. Brokoli filizlerinin tip 2 diyabetik hastalarda insülin dengesini düzenlediği ileri sürülmüştür. Brokolide bulunan, kükürt ve amino asitlerin varlığı (C vitaminiyle birlikte) brokoliyi çok iyi bir kan temizleyici ve ürik asit gibi serbest radikaller ile toksinlerin atılmasına yardımcı bir besin yapmaktadır. Brokoli, kan dolaşımını rahatlatır ve libidoyu yükseltir. Demir ve protein açısından zengin olan brokoli anemi gelişimini önler ve anemi sorunu olanlar için çok faydalıdır.

        Bağışıklık sistemini güçlendirir
        Brokoli gibi faydalı sebzelerden günde bir porsiyon tüketiminin yaşlanmayı yavaşlattığı ve bununla ile ilişkili zihinsel gerilemeyi önlediği bazı bilimsel araştırmalarda ileri sürülmüştür. Brokoli, içinde bulunan kuersetin insülin duyarlılığı kaybı, kilo alımı ve fiziksel aktivitede düşüş gibi tipik yaşlanma etkilerini azaltarak bağışıklık sistemini güçlendirir ve enerji üretimi kaybını telafi eder.
        Brokoli içinde bulunan Sülforafan da yaşlanma sürecini yavaşlatır.

        Göz sağlığını korur
        Brokolide bulunan bileşik ve vitaminler göz sağlık için çok faydalıdır. Lutein ve zeaksantin yaşa bağlı göz rahatsızlıklarının önlenmesi ile ilişkilidir. A vitamini eksikliği gece körlüğüne neden olabilir ve brokoli vücutta A vitamini haline dönüştürülen beta-karoten içerir. Bu maddeler, gözlerin maküler dejenerasyonu ve kataraktlara karşı korunmasını sağlarken radyasyonun neden olduğu hasarı da onarırlar. Yapılan bir araştırma brokoli'nin beta-karoten bakımından zengin içeriğinin Amyotrofik Lateral Sklerozun (ALS) hastalığına yakalanma olasılığını azalttığını göstermiştir.

        Cilt sağlığını korur ve cildi gençleştirir
        Bol miktarda C vitamini içeren Brokoli, bağışıklık sistemi destekler ve alerji belirtilerini önler. C vitamini, cilt için ana destek sistemi olan kolajen oluşumunda gereklidir. Brokoli içerisindeki biyoaktif bileşikleri cilt kanserine yol açan UV radyasyon hasarına karşı koruyucudur. A ve C vitaminleri sağlıklı saçlar için gereken vitaminlerdir. Bir fincan brokoli günlük C vitaminin ihtiyacının %84'ünü karşılar.
        kanser

        Yorum yap


        • #5
          Brokoli sülforafanları ve hastalığı ile ilgili yeni kavramlar: geliştirilmiş-glukorafanin brokoli tarafından faz Ii antioksidan ve detoksifikasyon enzimlerinin indüksiyonu


          Don James , Sridevi Devaraj, Prasad Bellur , Shantala Lakkanna , John Vicini , Sekhar Boddupalli
          Nutrition Reviews , Cilt 70, Sayı 11, 1 Kasım 2012, Sayfa 654–665, https://doi.org/10.1111/j.1753-4887.2012.00532.x
          Yayınlanan:

          Soyut
          Brokoli tüketiminin uzun zamandır sağlıklı beslenmede rol oynadığı düşünülmektedir. Brokoli, in vivo biyolojik olarak aktif sülforafana metabolize olan bitkisel besleyici glukofanin (4-metilsülfinilbutil glukozinolat) önemli miktarlarda biriktirir. İn vitro, hayvan ve insan çalışmalarından elde edilen kanıtların üstünlüğü, sülforafanın faz II enzim indüksiyonu ile ilişkisini desteklemektedir. Bu, hem filizli hem de bütün kafalı, glukorafanin açısından zengin brokoli çeşitlerinin geliştirilmesine ivme kazandırdı. Turpgillerden sebzelerin, özellikle brokoli'nin kanser önleyici özellikleri on yıllardır araştırılmaktadır. Bununla birlikte, kısmen sülforafanı metabolize eden enzimlerdeki önemli polimorfizmlerin varlığı nedeniyle, brokolinin kanser insidansını veya ilerlemesini doğrudan etkilediğine dair kanıtlar belirsizdir. Brokoli sülforafan, faz II enzimlerinin en güçlü indükleyicilerinden biri olduğundan, brokolinin kardiyovasküler sağlık ve üst solunum yolu bağışıklığı gibi insan sağlığının diğer alanları üzerindeki etkisinin araştırılması önerilmiştir. Bu derleme, sülforafanlar tarafından faz II enzim indüksiyonunu destekleyen kanıtlarla ilgili bir güncelleme sağlar ve artan miktarlarda glukofafan ile brokoli çeşitlerinin üremesi için çıkarımlar sunar. Arttırılmış glukofanin içeren brokoli tüketimine ilişkin erken evre insan çalışmaları da tartışılmaktadır. Arttırılmış miktarlarda glukorafanine sahip brokoli çeşitlerinin üremesi için etkileri olan. Arttırılmış glukofanin içeren brokoli tüketimine ilişkin erken evre insan çalışmaları da tartışılmaktadır. Artan miktarlarda glukorafanine sahip brokoli çeşitlerinin üremesi için etkileri olan. Arttırılmış glukofanin içeren brokoli tüketimine ilişkin erken evre insan çalışmaları da tartışılmaktadır.brokoli , glukorafanin , faz II enzimler , sülforafan
          Başlık:

          GİRİŞ
          Meyve ve sebze tüketimi, sağlıklı beslenmenin temel unsuru olarak kabul edilmektedir. 1 , 2 Özellikle, brokoli gibi turpgillerden sebzeler daha iyi sağlık ve özellikle belirli kanserlerin daha düşük insidansı ile ilişkilendirilmiştir. 3 , – 6 Ek olarak, brokoli ürünleri, kardiyovasküler ve böbrek dokularında oksidatif stres ve hipertansiyon belirteçlerinde azalma ve ayrıca kirliliğe bağlı üst solunum yolu inflamasyonuna karşı koruyucu mekanizmaların indüklenmesi ile ilişkilendirilmiştir. 7 , – 9 Glukozinolatlar (GLS), Brassica'da doğal olarak bulunan kükürt bazlı bileşiklerdir.brokoli, Brüksel lahanası, lahana ve karnabahar gibi sebzeler ve bu nedenle, bu sebzelerin varsayılan sağlık yararlarını açıklamak için araştırmaların ana odak noktası olmuştur. Spesifik olarak GLS, bir yan zincir R ve bir kükürt bağlantılı β-D-glikopiranoz parçasına sahip p-tiyoglikozit N-hidroksisülfatlardır ( Şekil 1 ). 10 Brokoli çiçeklerinde biriken iki alifatik GLS, glukorafanın (4-metilsülfinilbutil) ve glukoiberin (3-metilsülfinilpropil)'dir. Tek başına sebzelerde GLS ile açık bir bitkisel besin biyoaktivitesi ilişkilendirilmemiştir; bununla birlikte, glukorafanın ve glukoiberin, ya bir hücre içi brokoli tioglukosidaz olan mirosinazın etkisiyle, sırasıyla biyoaktif izotiyosiyanatlar (ITC'ler), sülforafan (SF) ve iberine (IB) dönüştürülür, 11 ,12 veya insan kolonunun mikrobiyotasındaki tioglukosidazlar tarafından. 13 SF, brokoli (Calabrese) pozisyonundan elde edilen baskın ITC'dir ve IB, filizlenen brokoliden elde edilen başlıca ITC'dir. 14 Her iki türden brokoli melezleri, mevcut piyasa standartlarına kıyasla önemli ölçüde daha yüksek seviyelerde SF veya IB ile yetiştirilmiştir ve erken araştırmalar, hem in vitro hem de insan klinik çalışmalarında bu ürünlerin gelişmiş bir fonksiyonel etkisini göstermektedir.

          Şekil 1

          Yeni sekmede açSlaytı indir
          Glukozinolatın temel yapısı.

          Bu derleme, SF'nin faz II (PII) enzimlerinin indüksiyonu üzerindeki etkilerini özetleyecek ve farklı biyoaktif SF seviyeleri sağlayan kaynaklar karşılaştırıldığında bir doz-yanıt etkisinin kanıtını vurgulayacaktır. PII enzim indüksiyonunun önemi ve brokoli SF'nin insan sağlığı üzerindeki doğrudan etkisi ve vücuttaki diyet toksinlerinin, serbest radikallerin ve reaktif oksijen türlerinin detoksifikasyonu da sunulmaktadır.

          Maruziyetin biyobelirteçleri ve sülforafan biyoyararlanımı
          Hayvan çalışmalarından elde edilen kanıtlar, SF'nin başlangıçta glutatyon (GSH) ile reaksiyona girdiği, ancak nihayetinde idrarda SF'nin (SF-NAC) N-asetil-L-sistein (NAC) konjugatı olarak göründüğü merkapturik asit yolu tarafından metabolize edildiğini göstermektedir. ). 15 , – 17 Çalışmalar ayrıca serbest SF ve sistein konjugatının plazmada diğer konjugatlardan daha fazla olduğunu ve idrarda NAC konjugatına ek olarak önemli miktarlarda serbest SF ve sistein konjugatının mevcut olduğunu ortaya koymuştur. SF'nin ve diğer ITC'lerin tiyol konjugatlarının ITC'nin taşıyıcıları olarak hizmet ettiği zaten kaydedilmiştir ve SF-NAC'nin hücre ve hayvan çalışmalarında SF ile karşılaştırıldığında daha güçlü olmasa bile eşit derecede kimyasal önleyici potansiyel sergilediği gösterilmiştir. 16Taşıyıcı olarak hareket eden SF'nin tiyol konjugatlarının, biyolojik olarak kullanılabilir SF düzeylerini serum SF düzeylerinden belirgin olandan daha yüksek hale getirmesi muhtemeldir. 18

          İdrar SF konjugatları ve plazma SF gibi biyobelirteçler, küçük insan klinik deneylerinde biyoaktif SF'ye maruz kalmayı değerlendirmek için başarıyla kullanılmıştır. Örneğin, Conaway ve ark. 15 , 12 denekte tek doz buğulanmış veya taze brokolinin yenmesinden sonra GLS'nin metabolik kaderini incelemiş ve başlangıçtaki GLS içeriğine rağmen taze brokoliden SF'nin nispi görünür biyoyararlanımının buharda pişirilmiş brokolininkinden üç kat daha fazla olduğunu bulmuştur. her iki tipte de aynıydı. Hanlon et al. 19tek ve tekrarlanan çiğ brokoli alımını takiben SF'nin plazma farmakokinetik özelliklerini değerlendirmek için 10 gün boyunca altı denekle bir beslenme çalışması yürütmüştür. Çalışma, tek ve tekrarlanan brokoli alımını takiben plazma SF'nin farmakokinetik parametrelerinde hiçbir fark bulmadı. SF, tüketimin ardından hızla emildi, ancak tekrarlanan alımlardan katkı maddesi birikimi oluşmadı. Çalışma yazarları, birikim eksikliğini kısmen testte kullanılan ticari brokoliden gelen çok düşük SF seviyelerine bağladılar. Shapiro et al. 20GLS veya ITC içeren dozlarda brokoli filizi özü verilen 12 sağlıklı gönüllü ile bir faz I randomize, çift kör, plasebo kontrollü bir çalışma yürütmüştür. Bu çalışmada, SF preparasyonunun biyoyararlanımının (toplam idrar ITC atılımından elde edilen) son derece yüksek olmasına ve SF absorpsiyonunun ve metabolizmasının bireyler arası değişkenliğinin küçük olmasına rağmen, glukozinolat preparasyonunun biyoyararlanımının çok daha düşük olduğu bulunmuştur. ITC'nin toplam atılımı açısından denekler arasında büyük bir farktır (dolayısıyla biyolojik olarak kullanılabilir SF'deki büyük bireyler arası değişkenlik). Gasper et al. 21tek bir standart brokoli öğünü tüketildikten sonra SF'nin serum biyoyararlanımını incelemek için, tek bir standart brokoli öğününün üç katı kadar glukofafan içeren bir brokoli öğününe karşı, 16 denekte randomize çapraz diyet denemesi gerçekleştirdi. Yazarlar, plazmada SF ve tiyol konjugatlarını ölçmek için tandem kütle spektrometrisine bağlı sıvı kromatografi kullanarak standart brokoli veya yüksek glukofanin brokoli tüketimini takiben glutatyon S-transferaz mu 1 (GSTM1)-null ve GSTM1-pozitif deneklerde SF metabolizmasını karşılaştırdı ve idrar. GSTM1-boş denekler, GSTM1-pozitif deneklerle karşılaştırıldığında, plazmada biraz daha yüksek SF metabolit konsantrasyonlarına, tüketimden sonraki ilk 6 saatte SF metabolitlerinin idrarla daha hızlı atılımına ve alımdan 24 saat sonra daha yüksek bir SF atılım yüzdesine sahipti. En önemlisi,

          Genel olarak, brokoli filizleri, çiçekleri ve GLS veya ITC özleri ile yapılan bu ve diğer klinik çalışmalardan elde edilen bulgular, GLS'den SF'ye dönüşümde önemli bireyler arası farklılıkları yansıtmaktadır. Bu farklılıklar büyük olasılıkla, vücutta brokoli SF'nin değişken biyoyararlanımına, dönüşümüne ve atılımına katkıda bulunabilen bağırsak mikroflorası ve glutatyon S-transferaz (GST) polimorfizmlerindeki farklılıklardan kaynaklanmaktadır. GLS'den ITC'ye mikrofloral dönüşümdeki etkinliğin belirleyicileri karmaşıktır ve diyet, konak genetik faktörleri, etnik köken, cinsiyet, gastrointestinal geçiş ve hatta enterohepatik dolaşımdan etkilenir. 20Hem içsel hem de dışsal faktörler, brokolideki glukorafaninden SF'ye dönüşüm derecesinin ve dolayısıyla hücresel aktivite için mevcudiyetinin önemli belirleyicileridir. Son olarak, Gasper ve ark. 21 çalışması, yüksek glukofanin brokoli ile PII enzim indüksiyonu üzerinde farklı bir etki potansiyeli olduğunu öne süren bir glukofanin dozuna bağlı maruziyet profilini göstermektedir.

          Sülforafan tarafından faz II antioksidan enzimlerin uyarılması: in vitro ve hayvan kanıtı
          In vitro ve hayvan modeli verilerine dayanarak, brokoli SF'nin, sitokrom P450'ler gibi faz I (PI) aktivasyon enzimlerini inhibe ederek kanserojenlerin, toksinlerin, reaktif oksijen türlerinin ve diğer inflamasyon ve hücre hasarı indükleyicilerinin bazı etkilerini azalttığı görülmektedir. ve kinon redüktaz, tioredoksin redüktaz 1 ve heme oksijenaz 1 (HO-1) dahil olmak üzere PII antioksidan ve detoksifikasyon enzimlerinin indüksiyonu. 16 , – 22 PII enzimleri, reaktif oksijen türlerinin (ROS) seviyesi ile hücrede bulunan endojen tiyol tamponları, özellikle GSH ve tioredoksin (Trx) arasında kesin bir denge sağlayarak memeli hücrelerindeki redoks durumunu düzenler. oksidatif hasar. PII enzimleri ayrıca NAD + dengesinin korunmasında kritik bir rol oynar./NADH ve NADP + /NADPH. 23

          SF, tanımlanan PII enzimlerinin en güçlü indükleyicilerinden biridir ve insanlarda, bir antioksidan yanıt elemanına (ARE) bağlanarak hareket eden bir transkripsiyon faktörü olan nükleer faktör E2 ile ilişkili faktör 2 (Nrf2) yoluyla etki ettiği düşünülmektedir, bir cis -etkili güçlendirici sekans yukarı bu KB enzimleri kodlayan genlerin. 24 , 25 SF aktivitesiyle olan bu mekanik bağlantı, araştırmalarda hızlı bir büyümeye yol açmıştır. Sonuç olarak, in vitro, hayvan modellerinde ve insan klinik çalışmalarında SF kaynaklı sağlık yararlarına odaklanan çok sayıda yayınlanmış rapor bulunmaktadır. 9 , – 30Bu çalışmaların sonuçları, PII enzimlerinin gen ekspresyonunu düzenlemek için üç hücresel bileşenin birlikte çalıştığını açıkça ortaya koymuştur: 1) ARE'ler; 2) Nrf2, temel bir lösin fermuar transkripsiyon faktörü; ve 3) İndükleyiciler için sensör ve kimyasal hedef olan Kelch benzeri ECH ile ilişkili protein 1 (Keap1) ( Şekil 2 ). Keap1, Nrf2'yi aktin hücre iskeletine bağlar, böylece Nrf2 transkripsiyon faktörünün işlevini kontrol eder. 31Cullin 3 ile birlikte ITC, Keap1 gibi indükleyicilerin bu varsayılan kimyasal hedefi, Nrf2'yi sıkıca bağlar ve Nrf2'nin yaygınlaşmasına ve proteasomal bozulmasına yol açar. Keap1'in sülfüre maruz kalan sistein kalıntıları, elektrofilik indükleyiciler (örneğin, SF) ile etkileşime girerek, her yerde bulunmayı Nrf2'den Keap1'e, Keap1'e konformasyonel bir değişiklik yoluyla değiştirdiği bildirilen konformasyonel değişikliklere neden olur. Gerçekte Keap1'in yıkıcı kaybı, Keap1'in Nrf2 baskısının ortadan kaldırılmasının ardından küçük Maf transkripsiyon faktörleri ile Nrf2 nükleer birikimine ve heterodimerizasyona yol açar. 32 Bu daha sonra kompleksin ARE'ye bağlanmasıyla ve PII enzimlerinin transkripsiyonunu aktive etmek için bazal transkripsiyonel makinelerin işe alınmasıyla sonuçlanır. Bu mekanizma, son deneylerle desteklenmektedir.Nrf2 nakavt fareler, elektrofilik ksenobiyotik moleküller tarafından modüle edildiği gibi Nrf2'ye bağlı gen ürünlerinin koruyucu rolü için önemli kavramsal kanıt sağlar. Nrf2-Keap1 yolu yoluyla 25 SF aracılı PII enzim indüksiyonu, son on yılda çok sayıda inceleme makalesinde iyi belgelenmiştir. 4 , – 36

          şekil 2


          Nrf2 aracılı yol yoluyla sülforafan (SF) tarafından faz II enzimlerinin uyarılması. Kısaltmalar : ARE, antioksidan yanıt elemanı.
          SF'nin varsayılan faydalarının hikayesi gelişmektedir ve SF'nin PII antioksidan ve detoksifiye edici enzim seviyeleri ile ilişkisini destekleyen kanıtlar birikmeye devam etmektedir. Angeloni et al. 37 , antioksidan PII enzimleri glutatyon redüktaz (GR), GST, glutatyon peroksidaz, NADPH:kinon oksidoredüktaz-1 (NQO1) ve tioredoksin redüktazın (TrxR) gen transkripsiyonunun, protein ekspresyonunun ve enzim aktivitesinin zamana bağlı indüksiyonunu araştırdı. Kültürlenmiş sıçan neonatal kardiyomiyositlerinde SF. SF'nin ayrıca hücre içi reaktif oksijen türlerinin (ROS) üretimini azalttığı, hücre canlılığını arttırdığı ve 48 saatlik tedaviden sonra DNA fragmantasyonunu azalttığı bulundu.

          İnsan yetişkin retinal pigment epitel (RPE-19) hücrelerinin all-trans- retinaldehit varlığında ultraviyole ışığa maruz kalması, foto-oksidatif sitotoksisite ile sonuçlanır. 38 RPE-19 hücrelerinin hücre ölümüne karşı koruma gösterildi, bu sayede SF ile önceki tedaviyi takiben hücre değişkenliği %50 daha fazlaydı. Aynı çalışmada, Keap1 −/− , Nrf2 −/− ve Nrf2 −/− :Keap1 −/− nakavtları olan farelerden alınan embriyonik fibroblastlarizole edilmiş ve retinaldehit varlığında uzun dalga ultraviyole ışığından foto-oksidatif strese maruz bırakılmıştır. Ortaya çıkan hasarın, Nrf2 transkripsiyon faktörünün bastırılmış veya eksik olmasına doğrudan bağlı olduğu bulundu; foto-oksidatif hasara karşı direncin büyüklüğünün, her ikisi de Nrf2 bazlı indüksiyon ürünlerinin antioksidan GSH ve PII enzimi NQO1'in bazal seviyelerine paralel olduğu bulundu. Bu çalışmaların sonuçları, PII enzimlerinin uyarılması için aktif bir Nrf2 transkripsiyon faktörünün gerekliliğini göstermekte ve bu süreçte SF'nin doğrudan müdahalesi durumunu güçlendirmektedir. İlgili bir çalışmada, yazarlar, insan RPE-19 hücrelerinin 24 saat boyunca bir dizi SF konsantrasyonu (0-5 µM) ile tedavisinin GSH konsantrasyonları üzerindeki etkilerini karşılaştırdılar.39 Bu açıkça SF'nin GSH düzeylerini doza bağlı bir şekilde ve insanlarda elde edilebilir olduğu gösterilen bir maruziyet düzeyinde artırdığını gösterir. 21

          Nrf2 +/+ (yabani tip) ve Nrf2 -/- ( Nrf2 mutant) farelerin kullanıldığı bir hayvan çalışmasında , brokoli tohumlarının (26.4 mmol/kg glukorafanin + glukoiberin) %15 a/a diyet olarak uygulanmasının, vahşi tip farelerin mide, ince bağırsak ve karaciğerinde NQO1, GST ve glutamat sistein ligaz katalitik alt birim aktivitelerinde yaklaşık 1.5 katlık bir artışa, ancak mutant farelerde değil ( Nrf2 -/- ). 40Ne yazık ki, verilerden farelerin ITC'lere maruz kalma düzeylerini değerlendirmek imkansızdır. Aynı çalışmada, %61 IB ve %30 SF (etkin konsantrasyon 0.6 µmol/L toplam ITC'ler) içeren sulu bir brokoli tohumu özütünün glutatyon S-transferaz alfa (GSTA)1/2, GSTA3, NQO1 ve murin Hepa-1c1c7 ve sıçan karaciğer RL-34 hücrelerinde üç kat ile on kat arasında glutamat sistein ligaz katalitik alt birimi.

          Başka bir hayvan çalışmasında, tek bir 150 umol oral SF dozunun farmokinetiği sıçanlarda (her biri yaklaşık 210 g) incelenirken, aynı zamanda önemli PII enzimlerinin transkripsiyon ve translasyonu değerlendirilir. 41 Yazarlar, meme dokusunda ters transkripsiyon polimeraz zincir reaksiyonu (RT-PCR) ile NQO1 ve HO-1 transkriptlerinde artışla birlikte idrar, plazma ve meme dokusunda SF metabolitlerinin arttığını bulmuşlardır. Ayrıca meme dokusunda immün boyama kullanarak NQO1 enzimatik aktivitesinde üç kat artış ve HO-1 proteininde dört kat artış tespit ettiler. Benzer bir doza bağımlı çalışmada, erkek Fischer 344 sıçanları, çift beslemeli kontroller kullanılarak oral gavaj yoluyla artan dozlarda SF ile tedavi edildi. 42Bu deney setinde, SF, sıçanların karaciğerinde, pankreasında veya kolonunda NQO1 ve toplam GST'yi indükledi. Bu PII enzim indüksiyon çalışmasında bariz bir doz tepkisi vardı, bu da daha yüksek seviyelerde glukorafanın kaynaklarının diyette daha yüksek seviyede antioksidan enzim indükleyici güç sağlayabileceğini ima etti ( Şekil 3 ).

          Figür 3

          Yeni sekmede açSlaytı indir
          2,6-diklorofenol-indofenolün (DPIP) ortalama ± SE azalması olarak ifade edilen, faz II enzimi kinon redüktazın (QR) indüksiyonu üzerindeki sülforafanın (SF) etkisi. Doza bağlı yanıt belirgindir. Yıldız işareti (*), ortalamanın bir çift beslemeli kontrol için olandan önemli ölçüde daha büyük olduğunu gösterir ( t testi, P  < 0.05). Matusheski ve Jeffery'nin izniyle çoğaltılmıştır. 42 En az iki çalışma, brokoli SF'nin kalp hasarı üzerindeki etkisini incelemiştir. Mukherjee et al. 43 sıçan 30 gün boyunca brokoli bulamacı ile beslenmiş ve daha sonra izole edilmiş kalpler çalışma modu ile perfüze edilmiş ve 30 dakika boyunca iskemik hale getirilmiş, ardından 2 saat reperfüzyon yapılmıştır. Brokoli, postiskemik ventriküler fonksiyonu önemli ölçüde iyileştirdi, miyokard enfarktüsü boyutunu azalttı ve kardiyomiyosit apoptozunu azalttı ve ayrıca sitokrom c'yi azalttı.salınımı ve artan pro-kaspaz 3 aktiviteleri. İskemi/reperfüzyon, brokoli ile restore edilen veya güçlendirilen Trx1, Trx2, glutaredoksin 1, glutaredoksin 2 ve peroksiredoksin dahil olmak üzere tioredoksin süper ailesinin hem RNA transkriptlerini hem de protein seviyelerini azalttı. Brokoli, Keap1'in sitozolik bir baskılayıcısı olan Nrf2'nin ekspresyonunu arttırdı ve bu, ARE'nin Trx'in indüklenmesinde bir rolü olduğunu öne sürdü. Ek olarak brokoli, Trx tarafından transaktive edilebilen başka bir kardiyoprotektif protein olan HO-1'in ekspresyonunu indükledi. Bu nedenle, brokoli tüketimi, tioredoksinlerin redoks döngüsü yoluyla kalp koruyucu gibi görünmektedir. 43 Sonraki bir çalışmada, 44bu grup, pişmiş brokoli ile karşılaştırıldığında, buharda pişirilmiş brokolide kardiyoprotektif etkilerin daha üstün olduğunu göstermiştir. İki grup sıçan, 30 gün boyunca taze (buharda pişirilmiş) veya pişmiş brokoli ile beslendi ve benzer iskemi-reperfüzyon çalışmaları yapıldı.

          Hem pişirilmiş hem de buharda pişirilmiş brokoli, kontrole kıyasla, iskemik sonrası ventriküler işlevi önemli ölçüde iyileştirdi ve miyokard enfarktüsü ve kardiyomiyosit apoptozunu azalttı, ancak buharda pişirilmiş brokoli, pişmiş brokoli ile karşılaştırıldığında üstün kardiyoprotektif etkiler gösterdi. Trx1 ve öncüsü sülforafan, Trx2 ve Trx redüktaz dahil olmak üzere tioredoksin (Trx) süper ailesinin proteinlerinin ifadeleri, yalnızca buharda pişirilmiş brokoli grubunda geliştirilmiştir. Bu nedenle, buğulanmış brokoli, Trx'in gelişmiş redoks sinyali nedeniyle pişmiş brokoliden daha iyidir.

          Biyoaktif SF'nin hücresel fizyoloji üzerindeki etkileri hem doz hem de hücre tipi ile değişebilir. 17 Hücre kültürü çalışmalarından, 0,4-0,8 µM aralığındaki çok düşük SF konsantrasyonlarının, PII enzimlerinde bir dizi Nrf2'ye bağlı değişikliği indükleyebildiği gösterilmiştir. 45 Kültürlenmiş hücrelerde gözlenen değişikliklere neden olmak için gerekli konsantrasyonların, benzer aktivitelerin in vivo gerçekleşmesi için gerekli plazma seviyelerini yansıtıp yansıtmadığı kesin olarak bilinmemektedir. 17 İnsanlarda diyetsel glukofanin veya SF'ye odaklanan epidemiyolojik ve araştırma amaçlı çalışmaların sayısı literatürde çok daha azdır, ancak son yayınlar glukorafanın alımı ile PII enzim indüksiyonu arasında açık bir bağlantı olduğunu göstermiştir ve glukofanin ve nihayetinde SF dozları hakkında bazı ipuçları sağlar. PII enzimlerinin uyarılması ve bunların sağlıkla ilgili biyobelirteçler üzerindeki etkisi için gereklidir.

          İnsanlarda epidemiyolojik çalışmalar
          SF'nin GSH konjugasyonu vücuttan eliminasyon için önemli bir yol olduğundan, GSTM1-boş bireylerin (yani, GSTM1 aleli için null) daha az diyet SF salgılayacağı ve Nrf2 yolu yoluyla PII enzimlerini indüklemek için daha fazla müsait olduğu varsayılmıştır. . Bu nedenle, GST'si olmayan bireylerde daha faydalı bir etki büyük olasılıkla görülecektir. 46 , 47 Epidemiyolojik kanıtlar bu hipotezi evrensel olarak doğrulamamaktadır.

          GSTM1-boş veya GSTM1-pozitif denekler arasında brokoli alımının etkisi yedi vaka kontrol çalışmasında incelenmiştir. Bu çalışmaların üçünde, brokoli veya karışık turpgillerden sebzelerin alımı ile GSTM1'den yoksun denekler arasında kanser riski arasında bir ilişki vardı. 3 , – 6 Aksine, diğer üç çalışma, brokoli veya turpgillerden sebzelerin alımı ile GSTM1 pozitif denekler arasında kanser riski arasında bir ilişki buldu. 48 , – 50 Üç vaka kontrol çalışması ve bir kohort çalışması, GSTM1-boş denekler arasında toplam ITC veya Brassica alımının etkisini inceledi . Spesifik olarak, London ve ark. 51ITC tüketiminin, Şanghay'dan erkek denekler arasında, özellikle GSTM1-boş denekler arasında azalmış akciğer kanseri riski ile ilişkili olduğunu buldu. Ayrıca, Seow ve ark. hem GSTM1 null hem de glutatyon S-transferaz tau 1 (GSTT1) null olan Singapurlu denekler arasında yüksek diyet ITC'sinin önemli ölçüde daha düşük kolorektal kanser riski ile ilişkili olduğunu buldu. 52 Fowke ve ark. Çinli kadınlar arasında idrar ITC seviyelerinin meme kanseri riski ile ters orantılı olduğunu ve bu ilişkinin GSTM1 veya GSTT1'in homozigot delesyonu olan kadınlar için daha tutarlı olduğunu buldu. 53 Son olarak, Seow ve ark. 54Singapurlu Çinli denekler arasında turpgillerden sebzelerin genel tüketimi ile idrardaki toplam ITC seviyesi arasında anlamlı bir pozitif ilişki olduğunu bildirdi. ITC'nin idrarla atılımı, GSTT1-pozitif denekler için, GSTT1-boş deneklere göre çok daha büyüktü ve deneklerde turpgillerden sebze alımının düzeyine bağlıydı. Yukarıda özetlenen çalışmalar tarafından bildirilen sonuçlardaki farklılıklar muhtemelen birkaç faktörden kaynaklanmaktadır. Özellikle, farklı etnik popülasyonları kapsayan çalışmalarda, alım tahminlerini toplamak için farklı gıda sıklığı anketleri kullanılmıştır. Ek olarak, gıda sıklığı anketleri yoluyla elde edilen tahminler, yanıtlayanların hatırlama yanlılıkları nedeniyle olası yanlışlıklar içerebilir. Serum konsantrasyonlarının doğrudan ölçümleri olmadan en iyi koşullarda nispi besin emilimini tahmin etmek zordur ve gıda alımlarını tahmin etmenin zorluklarıyla birleştiğinde, bu endişe gözlemsel çalışmalardan SF etkisinin değerlendirilmesini zorlaştırır. Bu tür çalışmalar, GLS içeriği ve sağlık yararı arasında bir ilişki olduğunu ima ederken, glukofanin veya SF kaynaklarını kullanan uygun insan tedavi çalışmaları, brokoli'de ksenobiyotik ve oksidan detoksifikasyonu destekleyen nedensel faktörleri daha doğrudan ele alır.

          Sülforafan ile Faz II enzim indüksiyonu: insan müdahale çalışmaları
          Antioksidan FDA tarafından “Gastrointestinal kanallardan emildikten sonra serbest radikalleri inaktive eden veya serbest radikallerin başlamasını önleyen fizyolojik, biyokimyasal ve/veya hücresel süreçlere katıldığına dair bilimsel kanıt bulunan bir madde” olarak tanımlanmaktadır. kimyasal tepkimeler." 55Bu tanıma göre, PII enzimleri, katalitik olarak hareket eden (antioksidan eylemlerinde tüketilmeyen), nispeten uzun yarı ömürleri olan ve detoksifikasyona yol açan çok çeşitli kimyasal reaksiyonları katalize eden güçlü antioksidanlardır. 2011'in başlarından itibaren brokoli ile test makalesi olarak 20 müdahale çalışması dahil olmak üzere 130'dan fazla yayınlanmış çalışma bulunmaktadır. Brokoli tüketiminden SF tarafından PII antioksidan enzim indüksiyonu için destekleyici kanıt sağlayan beş tek veya çok dozlu insan klinik çalışması vardır ( bkz. Tablo 1 ). Böyle bir örnekte, Petri ve ark. 56altısı brokoli proksimal jejunumunun tek geçişli perfüzyonunu ve soğan ekstraktını 2 mL/dk ve diğer beşine kontrol perfüzyonu alan 11 gönüllü ile kontrollü bir çalışma yürütmüştür. Brokoli özütü, 11 uM SF içeriyordu; ancak perfüzyon süresi verilmediği için uygulanan toplam doz belirlenememiştir. Bu deneklerden pul pul dökülmüş enterositlerde PII enzimini kodlayan mRNA ölçüldü. Brokoli özütü, perfüzyondan önce ve sonra toplanan hücrelere kıyasla glutatyon S-transferaz alfa 1 (GSTA1) ve UDP-glukuronosiltransferaz 1A1 (UGT1A1) mRNA'sında hızla iki kat artışa neden oldu. Bu enzimler, kontrol perfüzyonu alan deneklerde önemli ölçüde indüklenmedi. Destekleyici veriler sağlamak için Petri ve ark. 56 ayrıca brokoliden alınan SF'nin GSTA1'in uyarılmasından sorumlu olduğunu ve soğanlardan gelen kersetin'in Caco-2 hücrelerinde UGT1A1'in uyarılmasından sorumlu olduğunu gösterdi.

          İnsanlarda faz II enzimlerinin indüksiyonunu destekleyen brokoli sülforafan çalışmaları.
          Çok haftalı, randomize, plasebo kontrollü besleme (2 hafta): 100 umol glukorafanin infüzyonu; 200 sağlıklı Çinli yetişkin Sülforafan emilir ve faz II detoksifikasyon enzimlerini indükler Kensler et al. (2005) 58
          Çok haftalık randomize, çapraz besleme (4 hafta): =160 g/gün turpgiller vs. mikro besin + lif; Sağlıklı 20 yetişkin, 36-80 yaş arası Brassica alımı, oksidatif stres göstergesinin daha düşük seviyeleri ile ilişkilidir. Fowke et al. (2006) 57
          Proksimal jejunumun tek doz perfüzyonu: 2 mL/dk brokoli özü; 11 konu Sülforafan, ince bağırsakta (%74) verimli bir şekilde emilir ve hızla faz II mRNA'yı indükler Petri et al. (2003) 56
          Standart brokoli ile yapılan çorba ve üç kat glukorafanin içeren brokoli ile yapılan çorba ile tek doz randomize, 3-fazlı, çapraz deneme; 16 denek, 18-46 yaş Sülforafan biyoyararlıdır ve dozla ilişkilidir; hızla faz II mRNA'yı indükler Gasper et al. (2007) 22
          Plasebo kontrollü, doz yükseltme denemesi (25–100 g brokoli filizi homojenatı); 65 sağlıklı denek, = 18 yaş Brokoli sülforafan, insanların üst hava yollarında hızla faz II mRNA'yı indükler Riedl et al. (2009) 8
          4 haftalık plasebo kontrollü, randomize, çift kör, 2 dozlu deneme: 5 g/gün ve 10 g/gün brokoli filizi tozu; Tip II diyabetli 63 kişi Oksidatif stresin biyobelirteçleri, 10 g/gün tedavi ile %5 oranında azaltılmış oksitlenmiş düşük yoğunluklu lipoprotein ile her iki dozda da azalmıştır. Bahadoran et al. (2011) 60
          Yeni sekmede aç
          Gasper et al. 22standart brokoli ve yüksek glukofanin (HG) brokolinin (standart brokoliden üç kat daha fazla glukofanin içeren brokoli) su ile karşılaştırıldığında tek bir öğün olarak etkisini incelemek için 17 denekte randomize, çapraz bir diyet denemesi gerçekleştirdi. Bu çalışma, tedaviler arasında 21 günlük bir arınma periyodu içermiştir; bundan sonra denekler, normal brokoli tedavisinde 102 µmol SF ve yüksek glukofanin (HG) brokolide 344 µmol SF veren test brokolinden yapılan 150 mL bir çorba tüketmiştir. tedavi. Yemekten önce ve yemekten 6 saat sonra mide mukozası biyopsileri yapıldı (zaman noktası başına 4 numune). Gen ekspresyonundaki değişiklikler, HG brokoli tüketiminin PII antioksidan ve ksenobiyotik metabolize edici enzimler için çoklu genlerin yukarı regülasyonu ile sonuçlandığını gösteren genom mikrodizileri kullanılarak değerlendirildi. TrxR, birkaç aldoketoredüktaz ve glutamat sistein ligaz değiştirici alt birimi (GSH sentezi) dahil. Sadece bir oksidoredüktaz tipi gen (yani, hidroksisteroid [11-β] dehidrojenaz 2) standart brokoli ile yukarı regüle edildi. Gerçek zamanlı polimeraz zincir reaksiyonu (PCR), su, standart brokoli ve HG brokoli karşılaştırıldığında TrxR ve glutamat sistein ligaz değiştirici alt biriminin ekspresyonu için pozitif bir doz ilişkisi olduğunu gösterdi: HG brokoli, bu gen ürünlerinin su üzerinde iki kat indüksiyonu gösterdi ve standart brokoli kontrolleri (Şekil 4 ).

          Şekil 4

          Yeni sekmede açSlaytı indir
          Yüksek glukozinolat (HG) brokoli tüketiminden 6 saat sonra bir denekte gerçek zamanlı ters transkriptaz polimeraz zincir reaksiyonu ile ölçülen tioredoksin redüktaz 1 (Tr1) (A) ve glutamat-sistein ligaz değiştirici alt biriminin (GCLM) (B) ifadesi , standart brokoli (S) ve su (W). Veriler, log2-kat değişiklikleri olarak ifade edilir ve ± SEM, n  = 10 (A) veya n = 6 (B) anlamına gelir. Yıldız işaretleri, ön müdahaleden farkı gösterir: * P  ≤ 0.05; ** P  ≤ 0.001. Gasper ve ark.'nın izniyle çoğaltılmıştır. 22 Riedl et al. 8insanlarda üst solunum yolu hücrelerinde PII enzim ekspresyonunun indüksiyonu üzerinde tekrarlanan oral SF dozlarının bir güvenlik, etkinlik ve doz-etki denemesini gerçekleştirdi. Tek kör bir yükseltme bloğu doz tasarımı kullanıldı. Çalışmaya katılmak için California Üniversitesi, Los Angeles (UCLA) kampüsü ve çevresindeki topluluklardan altmış beş sağlıklı gönüllü alındı. Deneklere başlangıçtaki bronşiyal lavaj numuneleri verildi ve ardından 3 gün boyunca günde bir kez brokoli filizi homojenatı (BSH) içildi. Beş denek günde 25, 50, 75, 100, 125, 150, 175 ve 200 g BSH dozları tüketmiştir (eşdeğer günlük SF dozu 13, 25, 38, 51, 64, 76, 89 ve 102'de sırasıyla µmol/gün). Kontrol deneklerine, 0 µmol/gün SF sağlayan 200 g yonca filizi homojenatından günlük doz verildi. GSTM1'in ifadesi üst solunum yolunda glutatyon-S-transferaz pi 1 (GSTP1), NQO1 ve HO-1 değerlendirildi. PII enzimlerinin ekspresyonu, nazal lavaj sıvısı numunelerinde =100 g/gün BSH dozunda önemli ölçüde arttı. Bu dozda NQO1 en büyük indüksiyona sahipti ve bunu HO-1 takip etti. Kontrollerde PII enzim indüksiyonunda herhangi bir değişiklik olmadı. BSH'nin mukozal PII enzim ekspresyonu üzerinde önemli bir doz-yanıt etkisi vardı (P  < 0.001) ölçülen tüm PII enzimleri için. En yüksek BSH dozunda bazal enzim ekspresyon oranlarının ikiye katlanması gözlemlendi. Doza göre doğrusal korelasyonlar, ölçülen tüm PII enzimleri için, SF tarafından ortak indüksiyon yolu, yani Nrf2 aktivasyonu ile tutarlı olarak belirgindi . Çalışma, BSH'den ≥ 64 µmol/gün dozlarda oral SF'nin insan solunum yolunda önemli ölçüde PII enzim ekspresyonunu indükleyebileceğini göstermiştir.

          Fowke et al. 57  , bir mikro besin ve lif takviyesi müdahalesine karşı bir Brassica sebze müdahalesinin, sistemik oksidatif stresin stabil bir biyobelirteç olan idrar F2-izoprostan seviyeleri (F2-iP) üzerindeki etkilerini karşılaştırmak için bir randomize çapraz deneme ( n = 20) yürütmüştür . Denekler genel olarak sağlıklıydı ve Brassica sebze müdahalesi aşamasında 4 hafta boyunca 160 g/gün çoğunlukla çiğ Brassica sebzeleri (en yaygın: brokoli, karnabahar, Brüksel lahanası ve lahana) yemeleri talimatı verildi . Mikrobesin ve lif takviyesi aşamasında, deneklere günde 2 fincan Brassica'dan bu besinlerdeki artışa uyması için vitamin, mineral ve lif takviyeleri verildi.sebzeler. Brassica sebze müdahalesi sırasında sebzelerin fiili tüketimi 220 g ile 250 g/gün arasındaydı; bununla birlikte, GLS veya SF'nin eşdeğer alımları bildirilmemiştir. Brassica taban ya da (mikro elyaf müdahale ile karşılaştırıldığında bitkisel müdahale idrarda F2-iP azalmış seviyelerine yol açtı p  hem de <0.05). Yazarlar , belirli veriler sağlanmamasına rağmen , Brassica tüketiminin GSH rezervlerinde bir azalma yoluyla oksidatif stres belirtecini azalttığını öne sürdüler . F2-iP sentezi, prostaglandin H azaltılması bağlıdır 2GSH tarafından. GSH rezervlerinin, ya reaktif oksijen türlerine GSH konjugasyonunu katalize eden faz I/II enzimlerinin indüksiyonu yoluyla ya da SF gibi ITC'ler ile konjugasyon yoluyla GSH'nin sekestrasyonu yoluyla F2-iP sentezini inhibe etmek için yeterince tükendiği varsayılmıştır. ITC'ler ayrıca GSH sentezini de indüklediğinden, F2-iP'nin ITC'nin neden olduğu azalma mekanizması tam olarak anlaşılmamıştır. Özetle, bu çalışmanın bulguları, idrar F2-iP seviyeleri ile ölçüldüğü üzere , Brassica sebzelerinin bir antioksidatif etkisini desteklemektedir ; ancak bu etkinin mekanizması ve PII enzimlerinin ve GSH'nin rolü net olarak aydınlatılamamıştır.

          Kensler et al. 58 , glukorafaninin tüketiminin gıda kaynaklı bir kanserojen olan aflatoksinin atılımı üzerindeki etkisini incelemek için randomize, plasebo kontrollü bir çalışma yürütmüştür. Sağlıklı yetişkinler ( n  = 200) iki tedaviye randomize edildi ve 2 hafta boyunca günde 400 veya < 3 µmol glukofanin içeren infüzyonlar içti. Bu popülasyon seçildi çünkü aflatoksine yüksek, doğal maruziyetleri vardı. Tedavinin sonunda, aflatoksin B 1 DNA eklentisi AFB 1 -N7-Gua'nın idrar seviyeleri iki müdahale kolu arasında benzerdi; bununla birlikte, SF metabolitlerinin idrar düzeylerinin ölçümleri, biyoyararlanım açısından büyük ve önemli bireyler arası farklılıklara sahipti. AFB 1-N7-Gua, kanserojen aflatoksin B 1 tarafından oluşturulan bir DNA eklentisidir . Atılım, biyolojik olarak aktif bir dozun bir biyobelirteç görevi görür ve yüksek seviyeler, artan kanser riski ile ilişkilidir. Yazarlar, çalışma deneklerinde bağırsak mikroflorası tarafından glukorafaninin SF'ye hidroliz oranlarında bireysel farklılıklar olduğunu bulmuşlardır. Veri analizi her bir de ditiokarbamat boşaltım için izleyerek brokoli glukorafaninin sf biyoyararlanımında bu büyük değişkenlik için kontrol edildiğinde, istatistiksel olarak anlamlı bir ters ilişki ITC boşaltım seviyeleri ve AFB arasında bulundu 1-N7-Gua eklentileri. GLS, brokoli mirosinazın etkisiyle ITC'lere hidrolize edilir. Mirosinazın ısıya dayanıklı olmadığı göz önüne alındığında, büyük olasılıkla brokoli infüzyonunun termal hazırlığı sırasında yok edilir. Hayvan modellerinde, GST uyarılmasını azalttı ARB ile ilişkilidir 1 -N7-Gua. Kensler et al. 58 AFB azaltılması önerilir 1 -N7-Gua adüktleri Bu çalışmada, böylece DNA ve GSH ve azaltılması yönünde nükleofiller reaktif epoksit ara madde koyma şant nedeniyle SF GST indüksiyonu muhtemeldir. Bu nedenle, bu çalışma, brokoli alımından elde edilen biyoyararlı SF ile ilişkili idrardaki aflatoksin-DNA eklentisinin azalmasına ilişkin kanıtlar aracılığıyla, SF'ye maruz kalma ile GST gibi PII enzimlerinin indüksiyonu arasında bir ilişki olduğunu düşündürmektedir.

          Riso et al. 5920 deneği GSTM1 ve GSTT1 genotipleri için, deneklerin turpgiller içermeyen bir diyete kıyasla 10 gün boyunca 200 g/gün buharda pişirilmiş brokoli ile beslendiği bir çapraz tasarım kullanarak değerlendirdi. Denekler, çoğunlukla glukofanin, yaklaşık 100 mg C vitamini ve yaklaşık 5 mg karotenoid lutein ve β-karoten olan yaklaşık 200 umol/gün non-indolil GLS tüketmiştir. Brokoli tedavisi sırasında, GST genotipinden bağımsız olarak artan plazma karotenoid konsantrasyonları ve ilgili ITC'ler bulundu; bununla birlikte, substrat olarak 1-kloro-2, 4-dinitrobenzen ile plazmadaki GST aktivitesi ölçüldü ve brokoli tüketiminden etkilenmedi. Bu çalışmada, brokoli müstahzarı endojen brokoli mirosinazını yok edecekken, ITC'ye dönüşüm muhtemelen bağırsakta gerçekleşecekti. Bu çalışmada ölçülen serum ITC seviyeleri, muhtemelen tedavi numunelerinin ısıl işlem rejimi nedeniyle, yayınlanmış diğer çalışmalarla (0,4 µmol/L) karşılaştırıldığında nispeten düşüktü. Bu, brokoli müdahalesinin neden PII enzim indüksiyonunun bir ürünü olan plazma GST aktivitesi üzerinde bir etki göstermediğini açıklayabilir.

          Son zamanlarda Bahadoran ve ark. 6063 tip 2 diyabetli hastada brokoli filiz tozunun (BSP) oksidatif stresin biyobelirteçleri üzerindeki etkilerini araştırmak için çift kör, plasebo kontrollü, randomize bir klinik çalışma yürütmüştür. 63 gönüllü, 4 hafta boyunca 10 g/gün BSP, 5 g/gün BSP veya plasebo alan üç tedavi grubundan birine rastgele atandı. Serum toplam antioksidan kapasitesi, toplam oksidan durumu, oksidatif stres indeksi, malondialdehit ve oksitlenmiş düşük yoğunluklu lipoprotein (LDL) kolesterolü, başlangıçta ve tedavi rejiminin bitiminde ölçüldü. Üç günlük diyet hatırlamaları, toplam enerji ve besin alımlarında gruplar arasında önemli bir fark göstermedi. Bu çalışmada kullanılan dozlar, sırasıyla 10 g ve 5 g BSP dozu başına günlük 225 umol ve 112 umol SF sağladı. 4 hafta sonra,P  = 0,001), oksitlenmiş LDL kolesterol (%4,9; P  = 0,03) ve oksidatif stres indeksi (%13,7; P  = 0,001) ve  en yüksek BSP dozunda toplam antioksidan kapasitesinde (%15,9; P = 0,001) önemli bir artış . Yazarlar, serum SF konsantrasyonunu ölçmemiş veya indüklenmiş olabilecek herhangi bir PII enzimini değerlendirmemiş olsa da, sonuçlarını PII enzimlerinin indüksiyonu temelinde açıkladılar.

          Gelişmiş sülforafan yararı sağlamak için yüksek glukorafaninli brokoli yetiştirme
          Klinik öncesi in vitro ve hayvan modeli çalışmalarından, SF'nin Nrf2 yolu yoluyla enzim sentezinin uyarılması üzerindeki etkisinin doza bağımlı olduğu açıktır ( Tablo 2 ). Brokoli, SF'nin öncüsü olan glukofafaninin halihazırda en zengin ortak kaynağıdır ve SF alımını arttırmanın birkaç yolu vardır. İlk yol, toplam turpgillerden sebze alımını artırmak veya sebze tüketimini daha yüksek glukorafaninli sebzeleri tercih edecek şekilde değiştirmektir. Bunun gerçekleşmesinin en olası yolu, brokoli glukofanin açısından yüksek olduğundan ve Amerika Birleşik Devletleri'nde tüketilen tüm turpgillerin neredeyse %50'sini temsil ettiğinden, artan brokoli tüketimi olacaktır. 61İkinci yol, daikon turp gibi ikinci bir besin kaynağından mirosinazın eşzamanlı olarak tüketilmesinden kaynaklanabilecek glukorafaninin SF'ye dönüşümünü arttırmaktır. Üçüncü bir yol, daha fazla miktarda glukorafanini içerecek şekilde özel olarak geliştirilmiş gıdaları tüketmektir. Bu, örneğin, olgunlaşmanın glukofanin seviyeleri için optimal olan bir noktada hasat edilen sebzelerin tüketimini içerir. Alternatif olarak, en yüksek seviyelerde glukorafanin içeren bitki kısımları kullanılabilir. Bunun örnekleri, çok zengin bir glukorafanin kaynağı olan brokoli filizlerinde, brokoli saplarına göre glukorafanin açısından zengin olan 11 ve brokoli çiçeğinde bulunur. Daha fazla glukofanin içeriğine sahip brokoli başarıyla yetiştirildi. 62 Gasper ve diğerleri,R. Mithen tarafından yönetilen 22 , brokolinin yabani bir akrabası olan Brassica villosa'nın ticari brokoli çeşitlerinden daha yüksek konsantrasyonlarda alifatik GLS içerdiğini gösterdi. Bitki yetiştirme yöntemlerini kullanarak, B. villosa genomununüç segmentiniticari brokoliye soktular, bu da HG çeşidi SB1 ile sonuçlandı. Bu tek bir bitkiyi hibritleme ile gerçekleştirildi B. villosa çift haploit üreme hattına B. oleracea var. italica ticari çeşidi Marathon ile çaprazlanmıştır, sonuç fenotipik ve işaretleyici destekli seçim ile optimize edilmiştir. İnsanlarda SB1 kullanılarak birçok klinik çalışma yapılmıştır. 22Mithen'in brokolisi, aynı koşullar altında yetiştirilen ticari çek brokoli çeşitlerine kıyasla iki ila üç kat daha fazla glukofanin içerir. Bu yüksek glukofanin çeşidinin bir yararı, bütün bir gıdadan belirli bir bitkisel besin maddesine odaklanan beslenme müdahale çalışmalarına olanak sağlamasıdır.

          Tablo 2Sulforaphane/ Brassica ekstraktının spesifik faz II enzimleri üzerindeki etkilerine ilişkin insan, hayvan ve in vitro çalışmaların özeti.
          NQO1 13 ila 102 µmol/gün İnsan klinik; nazal lavaj hücreleri 0 ila 3 İfade Riedl et al. (2009) 8
          5 µM SF Laboratuvar ortamında; sıçan kardiyomiyositleri 2.2 İfade Angeloni et al. (2009) 37
          4.0 Aktivite
          9 µmol SF/gün Canlı fare; ince bağırsak hücreleri 1.6 Aktivite Thimmulappa ve ark. (2002) 25
          2.5 İfade
          50 µmol/L Laboratuvar ortamında; insan Caco-2 hücreleri 2.5 İfade Traka et al. (2005) 66
          5 µmol/L Laboratuvar ortamında; insan Hepa 1c1c7 ve RL-34 hücreleri 4.5 Aktivite McWalter ve ark. (2004) 40
          5.2
          0.16 ila 5 µM Laboratuvar ortamında; insan ARPE-19 hücreleri 2 Aktivite Gao et al. (2001) 39
          100 nM Laboratuvar ortamında; fare kortikal nöronları 8 Aktivite Vauzour et al. (2010) 67
          2.0 µmol/L Laboratuvar ortamında; insan NHBE hücreleri 2 İfade Tan ve ark. (2010) 68
          11.8 Protein
          5 µmol/L Laboratuvar ortamında; sıçan karaciğer Klon 9 hücreleri 3.9 Aktivite Lii et al. (2010) 69
          5 µM Laboratuvar ortamında; insan BEAS-2B hücreleri 15.0 İfade Ritz et al. (2007) 9
          Laboratuvar ortamında; insan NHBEC hücreleri 3.0
          kg vücut ağırlığı başına 40 ve 160 µmol ITC in vivo sıçan; mesane 2.4 ve 4.4 Aktivite Zhang et al. (2006) 70
          4 ve 8 µmol/L Laboratuvar ortamında; sıçan mesane NBT-II hücreleri 2.3 ve 2.6 Aktivite Zhang et al. (2006) 70
          0,534 ila 681 nmol İnsan klinik; deri 1 ila 2 Aktivite Dinkova-Kostova et al. (2007) 71
          0,5 µmol In vivo SKH-1 tüysüz fareler; deri 2.7 Aktivite Dinkova-Kostova et al. (2007) 71
          40 µmol/kg vücut ağırlığı/gün in vivo sıçan; idrar kesesi hücreleri 1.9 Aktivite Munday ve Munday (2004) 72
          3 µmol/g In vivo Nrf2 (+/+) fare; bağırsak sitozolü 1.5 Aktivite McMahon et al. (2001) 73
          50 µM Laboratuvar ortamında; insan LS-174 hücreleri 3.0 İfade McMahon et al. (2001) 73
          0.1 µM Laboratuvar ortamında; insan prostat epitel hücreleri 1.35 Aktivite Brooks ve ark. (2001) 74
          Brüksel lahanası özü in vivo sıçan; karaciğer hücreleri 2.6 Aktivite Sorensen ve ark. (2001) 75
          TrxR 5 µM Laboratuvar ortamında; sıçan kardiyomiyositleri 0,4 İfade Angeloni et al. (2009) 37
          8.0 Aktivite
          102 veya 344 µmol/gün İnsan klinik; Mide mukozası 1.5 veya 2.0 İfade Gasper et al. (2007) 22
          50 µmol/L Laboratuvar ortamında; insan Caco-2 hücreleri 8.8 İfade Traka et al. (2005) 66
          50 mg/kg vücut ağırlığı In vivo küvet/küvet fareleri; retina hücreleri 2.4 Protein Kong ve ark. (2007) 76
          0.1 µM Laboratuvar ortamında; fare kortikal nöronları 2.6 Aktivite Vauzour et al. (2010) 67
          2 µmol/L Laboratuvar ortamında; insan HepG2 hücreleri 1.5 Aktivite Bacon ve ark. (2007) 77
          10 µmol/L Laboratuvar ortamında; insan Caco-2 hücreleri 1.5
          1 ila 12 µM Laboratuvar ortamında; insan MCF-7 hücreleri 2,1 ila 4,5 İfade Wang et al. (2005) 78
          12 µM 4.0 Aktivite
          HO-1 13 ila 102 µmol/gün İnsan klinik; nazal lavaj hücreleri 0 ila 4 İfade Riedl et al. (2009) 8
          GST (veya izoformu verilmedi) 9 µmol /gün in vivo sıçan; kardiyomiyositler 1.3 Aktivite Thimmulappa ve ark. (2002) 25
          2,5 ila 6 İfade
          0.1 µmol/L Laboratuvar ortamında; fare kortikal nöronları 1.7 Aktivite Vauzour et al. (2010) 67
          5 µmol/L Laboratuvar ortamında; sıçan karaciğer Klon 9 hücreleri 1.8 Aktivite Lii et al. (2010) 69
          24 veya 120 mg/kg vücut ağırlığı in vivo sıçan; hepatik mikrozomlar 3.2 Aktivite Barillaları et al. (2007) 79
          kg vücut ağırlığı başına 40 ve 160 µmol ITC in vivo sıçan; mesane 1.4 ve 2 Aktivite Zhang et al. (2006) 70
          4 ve 8 µmol/L Laboratuvar ortamında; sıçan mesane NBT-II hücreleri 2.3 ve 2.6 Aktivite Zhang et al. (2006) 70
          40 µmol/kg vücut ağırlığı/gün in vivo sıçan; mesane 2.5 Aktivite Munday ve Munday (2004) 72
          %15 brokoli tohumları (ağırlıkça) In vivo Nrf2 +/+ fareler; mide, ince bağırsak ve karaciğer 0,5 Aktivite McWalter ve ark. (2004) 40
          Brüksel lahanası özü in vivo sıçan; karaciğer hücreleri 1.3 İfade Sorensen ve ark. (2001) 75
          GSTM1 13 ila 102 µmol/gün İnsan klinik; nazal lavaj hücreleri 0'dan 2'ye İfade Riedl et al. (2009) 8
          GSTP1 5 µM Laboratuvar ortamında; insan NHBEC hücreleri 2.0 Aktivite Ritz et al. (2007) 9
          3 µmol/g In vivo Nrf2 (+/+) fare; bağırsak sitozolü 1.4 Protein McMahon et al. (2001) 73
          13 ila 102 µmol/gün İnsan klinik; nazal lavaj hücreleri 0'dan 2'ye İfade Riedl et al. (2009) 8
          GSTA1 5 µmol/L Laboratuvar ortamında; sıçan karaciğer Klon 9 hücreleri 8.1 Aktivite Lii et al. (2010) 69
          5 µM Laboratuvar ortamında; sıçan kardiyomiyositleri 0.9 Aktivite Angeloni et al. (2009) 37
          15
          GSTA3 11 µM soğan/brokoli özü İnsan klinik; enterositler 2 İfade Petri et al. (2003) 56
          10 µM SF Laboratuvar ortamında; insan Caco-2 hücreleri 3
          3 µmol/g in vivo Nrf2 (+/+) fareler; bağırsak sitozolü 0,4 Aktivite McMahon et al. (2001) 73
          7 gün boyunca %15 (ağırlıkça) brokoli tohumları In vivo Nrf2 +/+ fareler; mide, ince bağırsak ve karaciğer 1.0 Aktivite McWalter ve ark. (2004) 40
          GSTA4 3 µmol/g in vivo Nrf2 (+/+) fareler; bağırsak sitozolü 0.7 Aktivite McMahon et al. (2001) 73
          3 µmol/g in vivo Nrf2 (+/+) fareler; bağırsak sitozolü 0.9 Aktivite McMahon et al. (2001) 73
          GR 0.1 µM Laboratuvar ortamında; fare kortikal nöronları 2 Aktivite Vauzour et al. (2010) 67
          GCLC 7 gün boyunca %15 (ağırlıkça) brokoli tohumları In vivo Nrf2 +/+ fareler; mide ve ince bağırsak 5 Protein McWalter ve ark. (2004) 40
          GSH 0.16 ila 5 µM Laboratuvar ortamında; insan ARPE-19 hücreleri 2 Protein Gao et al. (2001) 39
          Kısaltmalar : ARPE, ortaya çıkan retina pigment epiteli; BEAS, dönüştürülmüş insan bronş epiteli; GCLC; glutamat sistein ligaz katalitik; GR, glutatyon redüktaz; GSH, glutatyon; GST, glutatyon S-transferaz; HO-1, hem oksijenaz 1; ITC, izotiyosiyanat; NHBE, normal insan bronş epiteli; NHBEC, normal insan bronş epitel hücreleri; NQO1, NADPH: kinon oksidoredüktaz-1; SF, sülforafan; TrxR, tioredoksin redüktaz.

          Yeni sekmede aç
          Erken bir insan denemesinde, bu glukofaninle zenginleştirilmiş brokolinin tüketiminin dolaşımdaki SF ve SF konjugatlarını yükselttiği gösterilmiştir. 21 İlk denemeler ayrıca, SB1 brokoli'nin, iki kat daha yüksek glukorafanin seviyesi ile uyumlu olan, standart bir kontrol çeşidinden yaklaşık iki kat daha fazla belirli antioksidan ve metabolize edici enzimlerin transkripsiyonunu indüklediğini göstermiştir. Ticari kalitede bir brokoli (Beneforté ® ; Seminis Vegetable Seeds, Inc.), birkaç yıl ve agronomik ortamlarda ölçülen ticari standart hibritlere kıyasla iki ila üç kat daha yüksek glukorafanin içeriğine sahip Brassica villosa genetiğini içerecek şekilde yetiştirildi ( Şekil 5 ). 63Bu brokoli, Devaraj ve diğerleri tarafından yapılan bir ex vivo çalışmada kullanılmıştır, 64Brokoli özlerinin LDL oksidasyonunun inhibisyonu üzerindeki etkilerine bakan Dr. Oksitlenmiş LDL, kardiyovasküler plak oluşumu, plak instabilitesi ve artmış kardiyovasküler hastalık riski ile ilişkilendirilmiştir. Bu çalışmada, iki ila üç kat daha yüksek glukorafanin içeren brokoli özütü, LDL oksidasyonunu standart bir brokoli özünden iki kat daha fazla inhibe etti. Bu sonuç, yüksek glukofanin brokolinin sunduğu ücretsiz sağlık yararlarını daha iyi anlamak için, yüksek glukofaninli brokoli ile şu anda tüketiciye sunulan standart brokoli hibritlerini karşılaştıran insanlarda uygun şekilde kontrol edilen diyet müdahale denemelerine duyulan ihtiyacın altını çiziyor. Bu yazı yazılırken,65

          Şekil 5

          Yeni sekmede açSlaytı indir
          Beneforté® brokoli çiçeklerinde glukofanin yükselmesini standart çek hibritlere kıyasla katlayın. Brokoli, 3 yılda Kaliforniya, Arizona ve Meksika'da 23 yerde yetiştirildi. Beneforté ® içindeki glukorafanin içeriğinin en küçük kareler ortalaması, kontrollerde 23-29 mg/100 g taze ağırlık ile karşılaştırıldığında 70 mg/100 g taze ağırlıktı.

          ÇÖZÜM
          İnsan klinik çalışmalarından elde edilen veriler, brokoli ve SF'nin birkaç PII antioksidan enzimi (örneğin, GSTA1, TrxR, birkaç aldoketoredüktaz, glutamat sistein ligaz değiştirici alt birimi, GSTM1, GSTP1, NQO1 ve HO-1) indükleyebileceğini ve muhtemelen GSH düzeylerini modüle edebileceğini göstermektedir. . Ek olarak, bu enzimlerin birçoğunun A, C ve E vitaminlerinin aktif formlarının geri dönüşümünde rol oynadığı bilinmektedir. Bu derlemede belgelendiği gibi, in vitro ve hayvan çalışmalarından ve çoğu insan klinik çalışmasından elde edilen veriler, brokoli glukofanin alımından kaynaklanan SF tarafından PII enzim indüksiyonunun Nrf2 yolunun önemi (bkz. Tablo 2). Mevcut klinik veriler ayrıca brokoli tüketiminin biyolojik olarak kullanılabilir SF sağladığına dair destek sağlar, ancak mevcut miktar bireyler arasında önemli ölçüde değişiklik gösterir, muhtemelen brokoli glukofanininin SF'ye bağırsak mikrobiyal dönüşümünün bir sonucu olarak. Ek olarak, PII antioksidan ve detoksifiye edici enzim indüksiyonu için doza bağımlı olduğuna ve bu indüksiyonla bağlantılı varsayılan sağlık yararlarına dair kanıtlar vardır. Bu doz bağımlılığı, artan glukofanin tüketiminin insan sağlığını destekleyebileceğini düşündürmektedir. Gasper ve ark.'nın çalışmasında kullanılan yüksek glukorafaninin prototipi gibi brokoli melezleri. 22 veya Devaraj ve ark.'nın çalışmasında kullanılan yakın zamanda ticarileştirilmiş Beneforté ® brokoli. 64doğal glukorafaninin insan sağlığı üzerindeki etkilerinin daha fazla araştırılması için faydalı araçlar sağlar. Şu anda mevcut olan genel kanıt ağırlığı, brokoli için bir PII antioksidan enzim ile ilgili işlevi destekler ve brokoli alımını artırmak için güçlü bir argüman sağlar. İnsan sağlığını iyileştirmek için geliştirilmiş SF ile uzun süreli brokoli tüketiminin potansiyelini araştırmak için çok merkezli, plasebo kontrollü denemeler garanti edilir. Prototipik yüksek glukofaninli brokoli artık mevcutken, bu denemelerin bazıları halihazırda devam ediyor.

          İlgi beyanı. Tüm yazarlar, brokoli tohumlarına ticari ilgisi olan bir şirket olan Monsanto için çalışıyor veya araştırma fonu aldı. REFERANSLAR

          Yorum yap


          • #6
            Brokoli'den İzotiyosiyanat, Sülforafan ve Özellikleri Alena Vanduchova, Pavel Anzenbacher, ve Eva Anzenbacherova Çevrimiçi Yayınlanma: 23 Mart 2019https://doi.org/10.1089/jmf.2018.0024 Soyut


            Sülforafan, lahana, karnabahar ve karalahana gibi turpgillerden sebzelerde ve özellikle brokoli filizlerinde yüksek seviyelerde glukorafanın olarak depolanmış halde bulunan bir izotiyosiyanattır. Glucoraphanin, onu sülforafana dönüştürmek için bitki enzimi mirosinazını gerektirir. Sülforafan, merkapturik asit yolu yoluyla metabolize olur, glutatyon ile konjuge olur ve daha fazla biyotransformasyona uğrayarak metabolitler verir. Sulforaphane kapsamlı bir şekilde araştırılmaktadır ve sağlığa faydaları nedeniyle tıpta ilgi görmektedir. Sülforafanın çeşitli kanser türlerine karşı koruma sağlayabileceği, ayrıca kardiyovasküler hastalık riskini azaltabileceği ve otizm ve osteoporozda yardımcı olabileceği gösterilmiştir. İncelememiz, sülforafanın ilginç özelliklerinin kısa bir özetini sunmaktadır. Her ikisi de in vitrove in vivo yöntemler/modeller ve klinik çalışmalardan bahsedilmiştir.

            Sülforafanın Kimyasal Yapısı ve Metabolizması
            S ulforaphane bir kimyasal yapıya sahip 4-methylsulfinylbutyl izotiyosiyanat ya da 1-izotiyosiyanat-4-methylsulfinylbutane ( Şek. 1 ) ve biyolojik olarak inaktif öncü-glukorafaninin şeklinde (bitkilerde meydana gelen bir fitokimyasal olan Şek. 2 ). Bu öncü , yapılarında yerleşik bir şeker bileşenine (çoğunlukla d- glukoz) sahip olan fitokimyasallar-glukosinolatlar ( Şekil 3 )- grubuna aittir ve bunlar, mirosinaz adı verilen enzim tarafından hızla uygun izotiyosiyanata dönüştürülür.


            İNCİR. 1. Sülforafanın kimyasal yapısı.


            İNCİR. 2. Glukorafaninin kimyasal yapısı.


            İNCİR. 3. Glukozinolatın kimyasal yapısı.

            Bitkilerde en yaygın olarak bulunan diğer glukozinolatlar, glukorafanın (4-metilsülfinilbutil), glukobrasisin (3-indolmetil), sinigrin [2-propenil (allil)] ve progoitrin [(R)-2-hidroksi-3-butenil] hariçtir. Dönüşüm süreci, bitki dokularından mirosinaz enzimi salındığında, bitki dokularının ısırma, çiğneme, dilimleme ve dokuların diğer tahribatı ile bozulmasından sonra gerçekleşir. 1-4 Yemek hazırlama sırasında (pişirme, buharda pişirme veya mikrodalga tedavisi sırasında) enzim mirosinaz yok edildiğinde, olası bir izotiyosiyanat kaynağı, bağırsak mikroflorası tarafından glukozinolatların mikrobiyal bozunmasıdır. Bununla birlikte, mikrofloranın hidrolizinin çok verimli olmadığı ve insanlarda çok çeşitli ve değişken olduğu bildirilmiştir. 5-8

            Sebzelerdeki glukozinolatların içeriği
            Glukozinolatlar, özellikle glukorafanin (sülforafan öncüsü), genç brokoli bitkilerinde ( Brassica oleracea var. Italica ) ve Brüksel lahanası ( Brassica oleracea var. gemmifera ) gibi diğer turpgillerden sebzelerde (diğer kaynaklarla karşılaştırıldığında) özellikle yüksek konsantrasyonlarda bulunur . lahana ( Brassica oleracea var. Capitata ).

            Yayınlanmış bir çalışmada, 9 glukorafanin içeriği değerlendirildi ve yazarlar, brokoli filizlerinden elde edilen ekstrakttaki glukorafanin içeriğinin taze ağırlığın gramı başına 16.6  μ mol olduğunu buldu. Buna karşılık, olgun brokoli özütü , taze ağırlığın gramı başına 1.08 μ mol içeriyordu  . 9 Genç brokoli filizlerindeki toplam glukozinolat miktarı, taze ağırlığın gramı başına 22,7  μ mol ve olgun brokoli için taze ağırlığın gramı başına 3,37  μ mol'dür. 100 gr olgun brokolide 50-100 mg glukozinolat bulunabilir. 1 , 9 , 10Isıl işlem sırasında toplam glukozinolat miktarı önemli ölçüde değişir. Taze genç brokoli filizleri taze ağırlığın gramı başına 128 mg glukozinolat içerir, buna karşılık beyazlatılmış brokoli sadece 92 mg, pişmiş brokoli 47 mg ve dondurulmuş brokoli taze ağırlığın gramı başına 45 mg içerir. 11

            Pişirme brokolide glukozinolatların içeriğini etkiler
            Pişirme ve haşlama, brokolideki glukozinolatların içeriğini önemli ölçüde etkiler ve ayrıca bitki dokusunda bulunan enzim mirosinaz tarafından oluşturulan ürünlerin içeriğini de etkiler. Bir in vitro deneyde, brokoli tedavisinin glukofaninin sülforafana dönüşüm yüzdesini nasıl etkilediği araştırıldı. 12 Isıl işlem görmemiş ve liyofilize edilmiş brokolide öncüsü glukorafaninden oluşan sülforafanın yüzde miktarı %22.8'dir. Brokolinin buharda pişirilmesi (5 dakika) ve liyofilizasyonu, oluşan sülforafan miktarını %4.2'ye düşürürken, hafif ısıtma (60°C) sülforafan oluşumunu in vitro (%97.9 ) arttırır . 12

            sülforafan metabolizması
            Sülforafan, glukuronid öncüsünün hidrolizinin tek ürünü değildir, yüksek bir yüzdesi, sülforafan üzerinde çalışılan etkileri artık olmayan bir nitril'e dönüştürülür. Bazı brokoli çeşitlerinde epitiyospesifik proteinin (ESP) varlığı, glukozinolatların nitril ürünlere dönüşümünü arttırır. Ancak nitril ürünleri biyolojik olarak aktif değildir. Brokolide ESP'nin varlığının, glukosinolatların hidrolizi sırasında izotiyosiyanatlardan dokuz kat daha fazla inaktif nitril ürünlerinin üretilmesine yol açtığı yakın zamanda yayınlandı. 13–15Enzim mirosinaz ve ESP farklı termal stabiliteye sahiptir. Hafif pişirmede (60–70°C), mirosinaz işlevini korurken ESP aktivitesinin azaldığı gösterilmiştir. Sonuç, biyolojik olarak aktif olmayan nitril ürünlerinin üretimini azaltırken aynı zamanda izotiyosiyanat oluşumunu arttırdı. 13

            Bununla birlikte, literatürde pişmiş brokoliden sülforafan biyoyararlanımının eksikliği ve dolayısıyla sağlık yararlarının beklenen eksikliği hakkında çok fazla bilgi bulunmaktadır. 6 , 7 , 16 , 17 Mirosinazın ticari olarak temin edilebilen dondurulmuş brokoli içinde sülforafan oluşumunu katalize etme yeteneğinin koşulları Dosz ve Jeffery'de değerlendirildi. 18 Brassica oleracea'da sülforafan oluşumunun meydana geldiği optimum pH ve sıcaklık sırasıyla 5 ile 6 ve 14°C ile 25°C arasındadır. 18

            Glukosinolatların enzim mirosinaz tarafından dönüştürülmesinden sonra, genel olarak, izotiyosiyanatlar merkapturik asit yolu yoluyla metabolize edilir. İlk başta izotiyosiyanatlar, glutatyon transferaz (GST) katalizli bir reaksiyonda glutatyon (GSH) ile konjuge edilir. Bunu, sülforafan- N -asetilsistein (SFR-NAC) vermek üzere y- glutamiltranspeptidaz, sisteinilglisinaz ve N- asetiltransferaz tarafından katalize edilen ardışık bölünme reaksiyonları takip eder ( Şekil 4 ).


            İNCİR. 4.  İzotiyosiyanat sülforafan, glutatyon ile konjuge olan merkapturik asit yolu yoluyla metabolize edilir ve birkaç metabolit veren daha fazla biyotransformasyona uğrar.

            Sülforafan Tayini için Analitik Yöntemler
            Yüksek performanslı sıvı kromatografi yöntemleri
            Tohumlarda, bitki dokularında veya fonksiyonel gıdalarda sülforafan tayini için birçok yöntem yayınlanmıştır. Bu yöntemler çoğunlukla yüksek performanslı sıvı kromatografisi (HPLC) ile analize dayanır. 19-21 kadar HPLC metodlar da sülforafanın belirlenmesi için yayınlanmış, çoğunlukla bitki dokularında (çeşitli detektörler bir çok kullanarak) 19-25 insan plazmasında 26 veya farede. 27 Literatür 28 , bu bileşikle tedavi edilen insan karaciğer hücrelerinde sülforafanın belirlenmesi için UV saptamalı bir HPLC yöntemini açıklar.

            Son zamanlarda, izotiyosiyanatların veya glukozinolatların belirlenmesi için yöntemler geliştirilmiştir. Son zamanlarda, doğal olarak oluşan izotiyosiyanatların 22 belirlenmesi için kolonun 60°C'de ısıtılmasını içeren bir HPLC yöntemi önerildi ; ayrıca glukozinolatların ve karşılık gelen izotiyosiyanatların eş zamanlı tespiti için bir HPLC-elektrosprey iyonizasyon-tandem kütle spektrometrisi yöntemi yayınlandı. 24 İnsan idrarında sülforafan ve onun glukosinolat glukorafaninin tayini için tandem kütle spektrometrisine sahip bir ultra performanslı sıvı kromatografi yöntemi de kullanıldı. 25 Farelerde sülforafan metabolizmasını ve doku dağılımını belirlemek için beş sülforafan metabolitinin tümünün tandem kütle spektrometrisine (LC-MS/MS) bağlı HPLC analizi de yapıldı.

            Sülforafan ve metabolitlerinin en yüksek konsantrasyon seviyeleri ince bağırsak, prostat ve böbrekte bulundu. 27 Bununla birlikte, bu in vivo çalışma, bir sülfoksit olan sülforafanın ( Şekil 1 ) dokularda tiyoeter analoğu olan erusin 29 , 30'a indirgendiği gerçeğini yansıtmamaktadır ; bu nedenle, verilen dokularda elde edilen konsantrasyonlar doğru olamaz.

            siklo yoğuşma
            Siklokondenzasyon, idrar ve plazmada izotiyosiyanat eşdeğerlerinin veya sülforafan konjugatlarının (ditiyokarbamatlar) miktarının belirlenmesi için kullanılabilir. Bu spektroskopik yöntem, izotiyosiyanatların, visinal ditiol 1,2-benzenditiol varlığında 1,3-benzoditiyol-2-tiyon'a dönüştürülmesine dayanır; 1,3-benzoditiyol-2-tiyon, spektroskopik belirleme için oldukça uygun hassas özelliklere sahiptir. 31-33 Buna karşılık, herhangi bir reaktif izotiyosiyanat veya ditiyokarbamat özdeş siklik ürünü oluşturduğundan, bu yöntem tek tek izotiyosiyanatlar veya ditiyokarbamat arasında ayrım yapamaz. 33

            Sülforafanın Optik İzomerleri
            Sülforafan, sülforafan olarak iki optik izomerde doğal olarak meydana gelir ve öncüsü glukofanin, asimetrik bir kükürt atomuna sahiptir. Brokoli ve Arabidopsis thaliana'dan izole edilen glukorafaninin saf bir epimer olduğu (NMR yöntemleriyle) ve sülfoksit grubunun R-konfigürasyonuna sahip olduğu bildirildi, bu da konfigürasyonun hidroliz ürünü R-sülforafan'da enzim mirosinaz tarafından tutulduğunu düşündürdü. 34

            İlginç bir şekilde, sadece bir yayın sülforafanın R- ve S-enantiyomerinin ayrılması ve belirlenmesine odaklanmıştır. Turpgillerden sebzelerden sülforafanın kiral kromatografisi Okada ve ark. , 35 S-sülforafanın R-enantiyomeri ile birlikte tüm brokoli numunelerinde tespit edilmiştir. Bununla birlikte, fizyolojik aktivitelerde sülforafanın enantiyomerleri arasındaki fark hakkında sadece birkaç çalışma rapor edilmiştir.

            Sülforafanın R- ve S-enantiyomerinin farklı aktiviteler sergilediği daha önce yayınlanmıştır, R-sülforafan, sıçan karaciğeri ve akciğerindeki kanserojen detoksifiye edici enzim sistemlerinin S-izomerinden çok daha güçlü bir indükleyicidir. 36 Ayrıca sıçan karaciğer epoksit hidrolaz ve glukuronosil transferaz aktivitelerinin sülforafanın etkisiyle arttırıldığı bulunmuştur; Sülforafanın R-enantiyomeri, her iki aktiviteyi arttırmada S-enantiyomerinden daha etkiliydi. 37

            Sülforafan enantiyomerlerinin insan karaciğer mikrozomlarındaki sitokrom P450'nin enzim aktiviteleri üzerindeki etkisi in vitro olarak Srovnalova ve ark. 38 ; sülforafanın sitokrom P450 3A4/5 ve 2D6'nın aktivitelerini etkilediği bulundu, ancak önleyici deneyler bu bileşiğin enantiyomerlerinin varlığını yansıtmadı. Bununla birlikte, potansiyel inhibitörün fizyolojik olarak ilgili konsantrasyonlarında enzimatik aktiviteler önemli ölçüde etkilenmediği için bu etkileşimlerin klinik olarak önemli olması olası değildir (sülforafan ve metabolitlerinin plazma konsantrasyonu 1 μ mol/L' yi geçmez  ). 26 , 39Sülforafan Sağlık Faydaları


            Sülforafan, turpgillerden sebzeler ve birçok diyet nutrasötikleri ile yaygın olarak ve yaygın olarak tüketilen düşük toksisiteye sahip bir diyet fitokimyasalıdır ve insanlara uygulanması genellikle iyi tolere edilir. 40–42 İzotiyosiyanat sülforafan, çeşitli in vivo patolojilerde ve ayrıca deneysel modeller üzerinde in vitro çalışmalarda koruyucu etkisi nedeniyle son birkaç yılda kapsamlı bir şekilde incelenmiştir . 4 , 43 , 44 Sülforafanın etki mekanizmasını anlamayı amaçlayan birçok çalışma yayınlanmıştır. Sülforafan, oksidatif stres ve antioksidan kapasiteyi, nöroinflamasyonu ve otizmle ilişkili diğer birçok biyokimyasal anormalliği etkiler. 45, 46

            Sulforaphane otizm semptomlarını azaltır
            Günlük oral sülforafanın dozlarının otizm spektrum bozukluğu olan hastaların (stereotipik davranış ve bozulmuş sosyal etkileşim ve iletişim ile karakterize edilen) davranışları üzerindeki faydalı etkileri açıklanmaktadır. Sülforafanın otizmin tedavisi üzerindeki etkisini test etme fikri, sülforafanın uygun özelliklerine dayanıyordu. 47

            Otizmli çocuklar, kontrol çocukları ile karşılaştırıldığında, metiyonin döngüsü bileşiklerinin (metionin, S- adenosilmetiyonin (SAM), homosistein, sistatiyonin, sistein ve toplam GSH) plazma konsantrasyonunun taban çizgisini önemli ölçüde daha düşük ve S- adenosilhomosisteinin (SAH) önemli ölçüde daha yüksek konsantrasyonlarına sahipti. ), adenosin ve oksitlenmiş GSH. SAM'ın SAH'a oranının önemli ölçüde daha düşük olması ve oksidatif stresin artması anlamına gelen, yani azaltılmış GSH'nin oksitlenmiş GSH'ye önemli ölçüde daha düşük redoks oranı anlamına gelen bozulmuş metilasyon kapasitesi, otizmli çocukların metabolik profili ile ilgilidir. Metilasyon kapasitesinin azalması ve oksidatif strese karşı direncin azalması, otizmin gelişimine ve klinik tezahürüne katkıda bulunabilir. 45

            46 numaralı çalışmada , otizm patogenezinde immün aracılı mekanizmaların da yer alıp almadığı araştırılmıştır. Otistik hastalardan alınan beyin dokularını ve beyin omurilik sıvısını incelemek için immünositokimya, sitokin protein dizileri ve enzime bağlı immünosorbent deneyleri kullanıldı. Bu araştırma, serebral kortekste, beyaz cevherde ve özellikle otistik hastaların serebellumunda aktif bir nöroinflamatuar süreç göstermiştir.

            Otizmle ilgili 47 çalışmanın özeti, sülforafan alan önemli ölçüde daha fazla sayıda katılımcının sosyal etkileşimde, anormal davranışta ve sözlü iletişimde bir gelişme gösterdiğiydi. Çalışma 48'de açıklanan bulgular , özellikle pozitif ateş etkisi öyküsü olan hastalarda, sülforafanın otizm spektrum bozukluklarının semptomlarını iyileştirebileceğine dair ön kanıtlar sağlamıştır. Çalışma 49'da açıklanan sonuç , sülforafan bakımından zengin brokoli filizlerinden elde edilen bir ekstrakt ile takviye tedavisinin şizofreni hastalarında bilişsel eksiklikleri iyileştirme potansiyeline sahip olduğunu göstermektedir.

            Antikanser ajan olarak sülforafan
            Sülforafan, insan sağlığına faydalı bir madde olarak klinik uygulamada potansiyel olarak faydalı bir kemoprotektif ajan olarak tanımlanmıştır. Ayrıca sülforafanın deksametazon ile indüklenen apoptoza karşı koruyucu etkileri olduğu gösterilmiş ve altta yatan moleküler mekanizmalar aydınlatılmıştır. 50 Sonuçlar, sülforafanın, MC3T3-E1 hücrelerinde deksametazon ile indüklenen büyüme baskılanmasını ve laktat dehidrojenaz salınımını etkili bir şekilde engelleyebileceğini göstermiştir. Diğer çalışmalarda, sülforafanın pankreas kanseri, 51 kolon kanseri, 52 lösemi, 53 ve prostat kanseri 54 dahil olmak üzere çeşitli kanser türlerine karşı koruma sağlayabileceği gösterilmiştir.; sülforafanın kanser önleme üzerindeki etkileri Gupta ve ark . 55

            Sülforafan-ilaç etkileşimi
            Buna karşılık, spektroskopik çalışmalar 38 , sülforafanın hem demirine doğrudan bağlanması gözlemlendiğinden, insan karaciğer mikrozomal sitokrom P450 enzimleri ile sülforafanın doğrudan etkileşimi olasılığının olduğunu göstermiştir. Diğer deneyler, sülforafanın insan karaciğer mikrozomlarındaki iki ana sitokrom P450 enzimini in vitro (3A4/5 ve 2D6), 38 , yani insanlarda ilaç metabolizmasının çeşitli önemli reaksiyonlarında yer alan enzimleri inhibe ettiğini göstermiştir . 56

            İnsan diyetinde yaygın olarak bulunan bazı fitokimyasallar, sitokrom P450 gibi ilaç metabolize edici enzimler düzeyinde klinik olarak anlamlı ilaç etkileşimlerinden sorumlu olabilir; örneğin, olumlu sağlık yararları için yaygın olarak tüketilen greyfurt suyu. Greyfurt suyu, sitokrom P450 3A4'ün (esas olarak ince bağırsakta) geri dönüşümsüz bir inhibitörü olduğu bilinen 57 , furanokumarinler (6'-7'-dihidroksibergamottin olarak) içerir, 58 bu nedenle felodipin ve diğer yaygın olarak kullanılan ilaçların oral kullanılabilirliğinde bir artışa neden olur. . 59 Herhangi bir enzimatik ilaç metabolizması sisteminin olası modülasyonu, ilaçlar ve sülforafan arasında bir etkileşime neden olabilir. 60

            Sülforafan ve furosemid, verapamil ve ketoprofen arasındaki etkileşim, ilaç etkinliğinin ve ayrıca çoklu ilaç direncinin değişmesine yol açabilir, çünkü bu etkileşimler hem ilaç metabolizmasında hem de taşımada yer alan sistemlerin aktivitesini değiştirir. Sulforafanın, çalışılan ilaçlarla (verapamil, ketoprofen ve furosemid) antagonistik olarak etkileşime girdiği gösterilmiştir. IC 50 sülforafan koinkübasyon sonrasında, Caco-2 kanser kolon hücrelerinin değerleri ve seçilmiş ilaçlar IC yaklaşık üçte bir daha düşüktü 50 , tek başına da sülforafanın değeri (IC 50 değerleri belirlenmiştir: konsantrasyonları kültür içindeki hücrelerin% 50 ölümüne neden olan) . 60

            Sülforafanın diğer sağlık yararları
            Ek olarak, sülforafanın etkisi de osteoporoz semptomlarını iyileştirebilir. 50 Diyet izotiyosiyanat , osteoartritin in vitro ve in vivo modellerinde gösterildiği gibi hücrelerde kıkırdak yıkımını önleyebilir . Sülforafan, kondrositlerde NAD(P)H:kinon oksidoredüktaz 1 aktivitesini önemli ölçüde indüklemiştir ve matris metalloproteinaz-1 üretimini inhibe etmiştir; -3 ve -13 proinflamatuar sitokin ile uyarılan kondrositlerde. 61 Sülforafan ile tedavi edilen fareler, tip II kollajen ile uyarılan lenf nodu hücreleri ve dalak hücreleri tarafından proinflamatuar sitokinler interlökin-17, tümör nekroz faktörü a , interlökin-6 ve interferon- y üretiminde belirgin bir azalma ve sinovyal hiperplazi. 62 İzotiyosiyanatlar ve sülforafan ile yapılan ilk insan çalışması, artan brokoli alımının eklemde izotiyosiyanat alımı ile birlikte eklemde değişikliklere yol açtığını göstermiştir, bu nedenle diyet sülforafanın osteoartrit üzerindeki etkisini belirlemek için dikkatle tasarlanmış bir klinik araştırmaya duyulan ihtiyacı desteklemektedir. 63 Sulforaphane aynı zamanda bir transkripsiyon faktörü nükleer faktör eritroid 2-ilişkili faktör 2 (Nrf2) aktivatörüdür; Nrf2, oksidatif ve elektrofilik saldırılara karşı hücresel savunmada çok önemli bir rol oynar. 64 , 65 Nrf2 (sülforafan) indüktörü sülfidril (-SH) grupları ile reaksiyona girme yeteneğine sahiptir, bu nedenle Nrf2 kükürt kimyasına bağlıdır. 65

            Çözüm
            İncelememiz, birçok insan patolojisinde sülforafanın koruyucu etkisinin kanıtlarını özetledi. Birkaç in vitro , in vivove klinik çalışmalar brokolide glukosinolat glukorafanın formunda bulunan izotiyosiyanat sülforafanın kanserin önlenmesine potansiyel olarak katkıda bulunabileceğini göstermiştir. Sülforafan, sitoprotektif, antioksidan ve antiinflamatuar özelliklerinden dolayı ilgi çekicidir. Ayrıca dokularda, ayrıca tohumlarda veya fonksiyonel gıdalarda çoğunlukla HPLC ile analize dayalı olarak sülforafan tayini için yayınlanan analitik yöntemler de vardı. Brokolinin (veya diğer turpgillerden sebzelerin) pişirilmesi veya diğer ısıl işlemlerinin brokoli içindeki glukozinolatların içeriğini önemli ölçüde etkilediği ve ayrıca bitki dokusunda bulunan enzim mirosinaz tarafından oluşturulan ürünlerin içeriğini etkilediği bilinmektedir. Diyetle alınan fitokimyasal sülforafan düşük toksisiteli olarak kabul edilir ve insanlara uygulanması iyi tolere edilir ve bu nedenle sülforafan, klinik çalışmalar ve gıda takviyelerinin popüler bileşeni için uygun bir doğal maddedir. Sülforafanın insan sağlığı üzerindeki yararlı etkilerini tam olarak anlamak için, dikkatle tasarlanmış klinik çalışmaların yanı sıra etki mekanizmasına ilişkin daha ileri çalışmalara ihtiyaç vardır.

            Teşekkür
            Laboratuvarlarımız, Çek Cumhuriyeti Hibe Ajansı'ndan GACR 303/12/G163 hibesi, Palacky Üniversitesi IGA UPOL_LF_2017_012 öğrenci hibesi ve hibe NPU: LO1304 tarafından desteklenmektedir.

            Yazar Açıklama Beyanı
            Rakip finansal çıkarlar mevcut değildir.

            Yorum yap


            • #7
              Otizm Spektrum Bozukluğunda Etkili Terapötik Ajanlar Olarak Parke Bitki-Gıda Türevli Biyoaktifler

              Natália Cruz-Martins , 1, 2, 3 Cristina Quispe , 4 Celale Kırkin , 5 Ezgi Şenol , 6 Asli Zuluğ , 7 Beraat Özçelik , 8, 9 Adedayo O. Ademiluyi , 10 Olubukola Helen Oyeniran , 10 Prabhakar Semwal , 11, 12 Manoj Kumar , 13 Farukh Sharopov , 14 Victor López , 15 , 16 Francisco Les , 15 16 Iulia-Cristina Bagiu , 17 , 18 Monica Butnariu , 19 Javad Sharifi-Rad , 20 Mohammed M. Alshehri , 21 ve William C. Cho 22
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              Git: Soyut


              Otizm spektrum bozukluğu (OSB), sosyal ve iletişim eksikliklerinin ve tekrarlayan davranışların mevcut olduğu nörogelişimsel bir bozukluktur. Bitki kaynaklı biyoaktif maddeler, otizmin tedavisinde umut verici sonuçlar göstermiştir. Bu anlamda bu derleme, otizmin tedavisinde bitki kaynaklı biyoaktif moleküllerin kullanımına ilişkin dikkatli bir bakış açısı sağlamayı amaçlamaktadır. Biyoaktiflerin bolluğu arasında kurkumin, luteolin ve resveratrol mükemmel nöroprotektif etkiler ortaya çıkarmıştır ve nöropsikolojik bozuklukların tedavisinde etkili bir şekilde kullanılabilir. Bununla birlikte, klinik araştırmaların sayısı sınırlıdır ve hiçbiri otizm veya otizmle ilişkili bozukluğun tedavisi için onaylanmamıştır. Bu tür biyoaktif moleküllerin gerçek potansiyelini etkili bir şekilde değerlendirmek için daha fazla klinik çalışmaya ihtiyaç vardır.

              Git: 1. Giriş


              Otizm spektrum bozukluğu (ASD), artan tekrarlayan ve/veya kısıtlayıcı davranışların eşlik ettiği sosyal ve iletişim eksiklikleri içeren bir dizi davranışsal ve nörogelişimsel hastalıktır [ 1 ]. ASD kapsamında en yaygın olarak kaydedilen davranışlar şurada sunulmaktadır:Şekil 1. Son yıllarda OSB prevalansı çarpıcı biçimde artmıştır [ 2 ] ve Dünya Sağlık Örgütü'ne (WHO) göre, dünyadaki 160 çocuktan 1'inde OSB olduğu tahmin edilmektedir [ 3 ]. Bu bozukluğun etiyolojisi ve patogenezi tam olarak anlaşılmamasına rağmen, aracı olarak birçok çevresel ve genetik faktör önerilmiştir, bu nedenle, olası nörolojik ve biyokimyasal mekanizmaların yanı sıra anahtar moleküler aracıların tanımlanmasını sınırlamaktadır. Bununla birlikte, son kanıtlar, otistik bireylerde olası aracılar olarak hormonlar, amino asitler ve çeşitli biyokimyasal belirteçlerdeki değişikliklere işaret etmektedir [ 4 , 5]. Bundan başka, immün fonksiyon bozukluğu, anormal lipid metabolizması, glutamaterjik işlev bozukluğu ve oksidatif strese yükseltilmiş duyarlılık içeren birleştirici etyolojisi ASD [için önerilen 6 giderek ASD [mitokondriyal disfonksiyon bağlama çalışmaları,] 1 , 7 , 8 ]. Gerçekten de mitokondriyal disfonksiyon ve oksidatif metabolizma kusurları bipolar bozukluk, multipl skleroz, Parkinson hastalığı (PD), şizofreni, depresyon, OSB ve kronik yorgunluk sendromu gibi birçok kronik hastalığın karakteristiğidir [ 9].]. Mitokondri birçok hücre sürecinin ayrılmaz bir parçası olduğundan, bütünlüğünü etkileyebilecek birçok hakarete karşı hassas hale gelir. Ayrıca, kanıtlar OSB etiyolojisinde immün düzensizliğe işaret etmektedir [ 9 ]. Çeşitli çalışmalar, otizmi olanlarda [ 10 , 11 ] otoimmünite belirteçleri, anormal hücre bağışıklığı, sitokinlerin anormal ekspresyonu ve diğer çözünür bağışıklık aracılarının OSB'li çocuklarda belirgin olduğu [ 10 – 13 ] bağışıklık anormalliklerinin varlığını ortaya koymuştur .
              Bir resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: OMCL2021-1131280.001.jpg
              Şekil 1
              Otizm spektrum hastalıklarını (ASD) gösteren çizim.

              Bununla birlikte, OSB etiyolojisi ve altta yatan nedenlere ilişkin veri kıtlığı ile karşı karşıya kalındığında, etkili tedaviler geliştirme ve harekete geçirme yeteneği hala sınırlıdır. Bu nedenle, bozukluğun yalnızca komorbid belirtilerini hafifletmek için çaba gösterilmiştir [ 1 ]. Ancak OSB semptomlarını, finansal zorlukları ve ilaç yan etkilerini iyileştirmek için mevcut sınırlı tedavi seçeneklerinin bir sonucu olarak, diyet ve beslenme yaklaşımları OSB yönetiminin popüler bileşenleri haline gelmektedir [ 14 , 15 ]. Bu anlamda, bu derleme, ADS ve ilgili patofizyolojinin yanı sıra bitki-gıda biyoaktiflerinin kanıtladığı vaat edilen terapötik yetenekler hakkında kısa bir genel bakış sağlamayı amaçlamaktadır.

              Git: 2. Otizm Spektrum Hastalığı: Kısa Bir Bakış


              OSB, çocuklar arasında giderek daha sık görülen bir hastalıktır. Bugüne kadar, genetik veya çevresel olan çeşitli risk faktörleri (prenatal, perinatal ve postnatal) belirtilmiştir [ 16 ]. Yaklaşık %15 ASD vakası genetik bozukluklarla (kırılgan X sendromu, nörofibromatoz, tüberoskleroz ve Rett sendromu) [ 17 ] ve kodlama bölgelerindeki de novo mutasyonlar, kopya sayısı varyasyonları ve kromozomal değişiklikler gibi çeşitli genetik değişikliklerle bağlantılıdır. değişiklikler, OSB gelişimi ile ilişkili en sık görülen varyantlardır [ 18 , 19 ]]. OSB gelişiminde genetik faktörlerin önemi ikiz çalışmalarda kolaylıkla açıklanabilir, bu çalışmalardan elde edilen sonuçlar OSB uyum oranlarının monozigotik ikizlerde %30-99, çift yumurta ikizlerinde %0-65 ve 3-30 arasında olabileceğini göstermektedir. kardeşlerde sırasıyla % [ 20 – 23 ], yakın zamanda yapılan bir çalışmada monozigotik ikizlerde (% 50) daha düşük bir OSB uyum oranı gösterilmiştir [ 24 ].

              Bununla birlikte, bazı kanıtlar çevresel faktörler ve OSB gelişimi açısından tartışmalı sonuçlara işaret etmektedir. Bu çalışmalar aşılama, ileri ebeveyn yaşı, annenin sigara içmesi, gebelik ve doğum komplikasyonları, timerosal maruziyet, D vitamini eksikliği ve üreme teknolojileri gibi çevresel faktörlerin OSB ile güçlü bir şekilde ilişkili olduğunu [ 16 , 24 , 25 ], ancak az sayıda çalışma olduğunu göstermektedir. OSB riski ile hiçbir ilişki göstermedi [ 24 ]. Öte yandan, az sayıda çalışma, hem genetik hem de çevresel faktörlerin sinerjik bir şekilde hareket ettiğini ve epigenetik modifikasyonların gen/çevre arayüzünde aracılar olabileceğini öne sürdü [ 26 , 27 ].]. DNA metilasyonu, MECP2 mutasyonu, folat-metiyonin yolu enzimleri, histon asetilasyonu ve epigenetik değişikliklerin izlenmesi için kromozom yeniden modellemesi dahil olmak üzere çeşitli mekanizmalar bu şekilde önerilmiştir [ 28 ].

              Ek olarak, az sayıda araştırma grubu ASD'de oksidatif stresin rol oynadığını bildirmiş olsa da [ 29 ], glutatyon (GSH) metabolizmasındaki genetik anormallikler de değişen mitokondriyal fonksiyonla ilişkili olabilir [ 30 ]. Gerçekten de, anahtar intramitokondriyal reaktif oksijen türleri (ROS) nötrleştiricisi olan GSH, ASD'de azalır [ 31 , 32 ]. Ayrıca, ASD'de glutamat metabolizmasındaki değişiklikler suçlanmıştır; glutamat, OSB'de belirtilen mitokondriyal disfonksiyon ve selektif Purkinje nöron dejenerasyonunun olası bir nedeni olarak kabul edilmiştir [ 8 ].

              Git: 3. Tarihsel Perspektiften Güncel Klinik Uygulamaya


              Otizm ilk olarak Kanner [ 33 ] tarafından “duygusal temasın doğuştan gelen otistik bozukluğu” olarak tanımlandı . Daha sonra birçok araştırmacı otizmin tanımını ve tanı kriterlerini belirlemeye çalıştı [ 34 ]. Çocukluk otizmi tanı kriterleri 1993'te belirlendi [ 35 ]. Lobotomi ilk ASD tedavilerinden biriydi [ 36 , 37 ]. Psikoterapi [ 38 ] ve tutma terapisi [ 39 ] de uygulandı. Otizmde kullanılması onaylanan ilk tıbbi ilaç risperidondu [ 40 ].

              Son on yılda, hastalığın sıklık oranı giderek artmaktadır [ 41 ]. Otizm gibi nörolojik bozukluklar, dünya üzerinden toplumlarda yüksek bir etkinin yerini alıyor. Bu hastalıklardan kaynaklanan endikasyonlar popüler olmasına rağmen, mekanizmalar ve nedenler bileşiktir ve birden fazla parametreye dayanmaktadır [ 42 ]. OSB, farklı sözel beceriler, mantıksal işlevler ve çeşitli genetik etiyolojiler içeren çoklu işlev bozuklukları içerir [ 43 ].

              Sosyal işlevsellik için önemli olan nörobiyolojik sistemler, ASD biyobelirteç ve terapötik hedef tespiti için tartışmalı olarak en umut verici sinyal yollarıdır. Bugün, bu tür iki aday, arginin vazopressin (AVP) ve oksitosin (OXT) sinyal yolaklarıdır [ 44 ].

              Daha önceki klinik çalışmaların dışında, geleneksel tıp OSB tedavisinde yaygın olarak kullanılmaktadır [ 45 ]. Bununla birlikte, bu ilaçların olumsuz etkileri veya diğer ilaçlarla olumsuz etkileşimleri şüphelidir ve tedavi gören otistik çocukların ailelerine riskler hakkında bilgi verilmelidir [ 46 ].

              Japon geleneksel bitkisel ilaçları Kami-shoyo-san ve Yokukansan, otizmdeki davranış problemlerini iyileştirmede yardımcı olabilir [ 47 , 48 ]. Ayrıca Hindistan'da Ayurvedik, Siddha ve homeopatik tedaviler yaygın olarak kullanılmaktadır [ 49 ]. Örneğin, Panchagavya gritha otizm için etkili bir Ayurvedik ilaç olarak önerildi [ 50 ]. Ek olarak, akupunktur Çin'de de yaygın olarak kullanılmaktadır [ 51 , 52 ]. Elektroakupunkturun OSB'li çocuklar üzerinde olumlu etkileri bildirilmiştir [ 53 , 54 ].

              Bu ASD Böyle gıda seçicilik, beslenme yetersizlikleri, gıda alerjileri, intolerances, ishal ve kabızlık [olarak beslenme ve gastrointestinal sorunlar ile ilişkili edilebileceğini çeşitli çalışmalarda öne sürüldü 55 - 59 ]. Bu nedenle ketojenik diyetler, glütensiz ve kazeinsiz diyetler, yüksek yağlı diyetler, probiyotik kullanımı, gıda katkı maddeleri, deve sütü tüketimi ve diğer diyetleri içeren diyet yaklaşımları sıklıkla araştırılmıştır [ 57 ]. Multivitamin/mineral takviyeleri de sıklıkla reçete edilir [ 60 ]. Bazı gıda bileşenleri, OSB olan çocuklarda hem davranışsal hem de gastrointestinal semptomlara neden oluyor gibi görünmektedir [ 61].]. Otoimmünite, potansiyel çapraz reaktiviteye karşı gelişmiş bağışıklık tepkisinden ve beyin veya bağırsaktaki proteinlere karşı diyet proteinlerinden kaynaklanabilir. Dikkat çekici bir şekilde, spesifik protein kısıtlı diyetlerdeki çocuklar, kısıtlamasız diyetlerdeki çocuklara kıyasla immün ve kolonik intraepitelyal lenfositler açısından zengin olduğu bilinen altta yatan aktive edilmiş lamina propria lenfositlerinin (CD3+TNF- α +) daha düşük aşamalarını gösterir [ 62 ].

              Sindirim kapasitesi söz konusu olduğunda, OSB'li çocukların bir alt grubunda bozulmuşsa, etkinliği değerlendirmek için yapılan sınırlı sayıda araştırmaya rağmen, tam bir proteaz enzimi paneli ile sindirim enzimi takviyesi kullanılması başka bir tedavi seçeneğidir. davranışsal ve gastrointestinal koşullar üzerine sindirim enzimi takviyesi [ 63 ].

              Bir yandan, birçok incelemede probiyotik tedavisinin OSB ve gastrointestinal endikasyonları olan çocuklar için potansiyel bir tedavi olarak önerilmesine rağmen [ 64 ], 2009 itibariyle, doktorların sadece beşte birinin diğer tedavilerde probiyotik kullanmak için ilham aldığı açıklanmıştır. OSB'li çocuklar [ 65 ]. Bir araştırma, L. acidophilus yönetiminin (5 × 10⁹ CFU/gün, 2 ay boyunca günde iki kez) , araştırmalardaki çocukların yarısı olmasına rağmen, OSB ve gastrointestinal endikasyonları olan çocuklarda saldırgan patojenik kandidiyazis belirtecini belirgin şekilde azalttığını gösterdi [ 66 ]. sınırlı diyetlerdeydiler ve araştırma tasarımında bir kontrol grubu yoktu [ 66 ]. 2014 yılında Rossignol ve Frye [ 67], donepezil, galantamin, rivastigmin, takrin ve memantin dahil olmak üzere OSB'deki Alzheimer ilaçları üzerine çok sayıda çalışmayı sistematik olarak gözden geçirdi. Bazı ilaçların sonuçları, temel ve ilişkili OSB semptomlarının tedavisine karşı etkililik için cesaret verici kanıtlar gösterdi, ancak OSB bireylerini tedavi etmedeki etkinliklerini doğrulamak için klinik denemelere de ihtiyaç var.

              Git: 4. Biyoaktif Moleküller: Otizm Spektrum Hastalığında Yaklaşan Bir Anahtar


              OSB tedavisi olmayan yaşam boyu süren bir nörogelişimsel bozukluk olsa da, sinirlilik ve baskılanma gibi semptomları bastırmak ve OSB'ye eşlik eden depresyon, bipolar bozukluk ve anksiyete gibi diğer psikiyatrik sorunları tedavi etmek için bazı farmakolojik tedaviler mevcuttur [ 68 ]. Birkaç araştırmacı OSB'nin beslenme bozuklukları ile ilişkili olduğunu bildirmiştir. Bu nedenle, OSB tedavisinde diyet ve gıda tüketiminin önemi büyüktür [ 69 , 70 ]. Otizmin tedavisini desteklemek için belirli biyoaktif moleküller önerilmiştir. Bitki bazlı biyoaktif maddelerin otizm üzerindeki etkileri aşağıdaki alt bölümlerde özetlenmiştir. 4.1. Otizm Spektrum Hastalığında Biyoaktif Moleküllerin Rolü


              Nöroprotektif etkileri olan biyoaktif moleküller, OSB, depresyon ve bipolar bozukluk gibi nöropsikolojik bozuklukların tedavisinde doğal ajanlar olarak kullanılabilir [ 42 , 71 , 72 ]. Kurkumin, luteolin ve resveratrol, sıklıkla araştırılan bitki bazlı aktif bileşenlerdir.şekil 2).
              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: OMCL2021-1131280.002.jpg
              şekil 2
              ASD tedavisi için bazı potansiyel fitokimyasalların kimyasal yapısı.

              Zerdeçalın ( Curcuma longa L.) biyoaktif bir bileşiği olan kurkumin , otizm dahil nöropsikiyatrik bozuklukların tedavisinde kullanılma potansiyeline sahiptir [ 71 ]. Henüz klinik deneyler yapılmamış olsa da, kemirgenler üzerinde umut verici birkaç çalışma var. Bhandari ve Kuhad, propiyonik asit- (PPA-) ile indüklenen otizmli sıçanlarda 4 hafta boyunca 50, 100 ve 200 mg/kg günlük dozda curcumin tedavisinden sonra, curcumin'in otistik fenotipin çekirdeğini ve ilişkili semptomlarını baskılayarak restore ettiğini bildirdi. sıçanlarda PPA ile indüklenen otizmde oksidatif-nitrozatif stres, mitokondriyal disfonksiyon ve TNF- α ve MMP-9 [ 73]. Kurkumin, OSB için potansiyel bir farmakoterapötik adjuvan olarak geliştirilebilir. Ayrıca Al-Askar et al. [ 74 ], kalıcı otistik özelliklere sahip valproik asit (VPA-) ile indüklenen kemirgen modellerinde bozulmuş parametrelerin çoğunu iyileştirmede kurkuminin doğum sonrası terapötik rolünü bildirdi.

              Luteolin'in, ASD gibi maternal immün aktivasyonun neden olduğu nöral anormallikleri azaltabildiği bildirilmiştir [ 75 ]. Ek olarak, Asadi ve Theoharides [ 56 ], luteolin alerji artışı ve mitokondri stimülasyonu nedeniyle mast hücre aktivasyonunu inhibe ettiği için OSB tedavisinde kullanılabileceğini bildirmiştir. Ayrıca, diyet luteolin takviyesi, OSB'li çocuklarda serum interlökin-6 ve tümör nekroz faktörü düzeylerinin azalmasına neden olmuştur [ 76 ]. 26 hafta boyunca zeytinyağında luteolin (100 mg/kapsül), kersetin (70 mg/kapsül) ve rutin (30 mg/kapsül) içeren diyet takviyesi (10 kg vücut ağırlığı başına 1 kapsül) OSB'li çocuklar [ 77]. Ayrıca, Theoharides ve ark. [ 78 ], luteolin, kersetin ve rutin içeren bir diyet takviyesi olan NeuroProtek®'in OSB'li çocuklarda (4-12 yaş) bağırsak ve beyin iltihabı ile ilgili semptomları iyileştirdiğini bildirdi.

              Resveratrol, nörolojik bozukluklar üzerinde terapötik ve anti-inflamatuar etkiler göstermiştir [ 79 ]. Örneğin, 13 gün boyunca günlük 3.6 mg/kg enjeksiyonlarla otizme neden olmak için doğum öncesi aşamada VPA verilen sıçanların doğum öncesi resveratrol tedavisi, resveratrol ve VPA arasındaki düşük etkileşim ile davranış değişikliklerinde artışla sonuçlandı [ 80 ]. Başka bir çalışmada, günlük 5, 10 ve 15 mg/gün oral resveratrol tedavisinden sonra PPA kaynaklı otizmli sıçanlarda nörolojik, davranışsal, duyusal, biyokimyasal ve moleküler değişiklikler gibi otizmle ilgili işlev bozukluklarının restorasyonu bildirilmiştir. 4 hafta boyunca kg [ 81 ].

              Kore kırmızı ginseng takviyesi, otizm benzeri bozukluğu olan farelerin sosyal etkileşimini geliştirdi [ 82 ]. Gonzales et al. [ 83 ], VPA'nın neden olduğu otizmli (doğum öncesi maruziyet) farelerde günlük 100 veya 200 mg/kg Kore kırmızı ginseng oral dozuna bağlı olarak motor koordinasyon yeteneği üzerinde hiçbir etkisi olmayan otizmle ilgili davranış problemlerinde bir iyileşme bildirdi.

              Niederhofer [ 84 ] , üç hastanın Ginkgo biloba tedavisinden sonra “anormal davranış” ve semptom kontrol listesinde iyileşme gözlemledikleri için, otizm hastalarının tedavisine Ginkgo biloba eklenebileceğini öne sürmüştür . Bununla birlikte, Ginkgo biloba özütü, otistik çocukların tedavisi için standart otizm ilacı olan risperidon'a ek olarak kullanıldı ve önemli bir etki gözlenmedi [ 85 ].

              Brokoli filizlerinde yüksek miktarlarda bulunan sülforafan gibi izotiyosiyanatların ADS semptomlarını iyileştirdiği bulunmuştur [ 72 ]. Ayrıca, OSB'li erkek hastalara (13-30 yaş arası) sülforafan açısından zengin brokoli filizi özütleri kapsülleri (50  μ mol/kapsül) vücut ağırlığına göre dozlarda (<100 lb için bir kapsül, 101–100 lb için iki kapsül) verildi. 199 lb ve >150 lb için üç kapsül) ve oksidatif stres, zayıflamış GSH sentezi, düşük mitokondriyal fonksiyon, azalmış oksidatif fosforilasyon, lipid peroksidasyonu ve nöroinflamasyon gibi OSB ile ilgili problemlerde iyileşme bildirilmiştir [ 86 ].

              Tüm bu çalışmalar, bazı doğal bitki-biyoaktif bileşiklerin OSB'nin kontrolünde umut verici araçlar olabileceğini göstermektedir.tablo 1). tablo 1


              ASD yönetiminde bitkilerden biyoaktif bileşiklerin koruyucu etkisi.
              Curcumin: 4 hafta boyunca 50, 100 ve 200 mg/kg Nörolojik, davranışsal, biyokimyasal ve moleküler değişiklikler OSB'nin yönetimine yol açar [ 71 , 73 , 74 ]
              Luteolin: 100 mg/kapsül
              Quercetin: 70 mg/kapsül
              Rutin: 30 mg/kapsül
              26 hafta boyunca
              OSB'yi yönetmek için geliştirilmiş uyarlanabilir işlevsellik ve davranış bozuklukları [ 56 , 75 – 78 ]
              Resveratrol: 13 gün boyunca 3.6 mg/kg OSB'nin yönetimine yol açan gelişmiş nörolojik davranışsal, duyusal, biyokimyasal ve moleküler değişiklikler [ 79 – 81 ]
              Sülforafan: 50  μ mol/kapsül ASD'nin başarılı yönetimi [ 72 , 86 ]
              Diğer biyoaktif formülasyonları da otistik bozuklukların tedavisinde kullanılabilir. Örneğin, folinik asit (800  μ g suyu, günde iki kez oral toz), betain (suyunda 1000 mg'lık ağızdan toz günde iki kez) ve metilkobalamin (75  μ g / kg, sıvı enjekte edilebilir haftada iki kez), metabolik dengesizliği gelişmiş otistik çocuklarda [ 87 ]. Ayrıca, ADS çocuk glutatyon durumundaki iyileşme metilkobalamin sonra gözlenmiştir (75  μ g / kg arasında, her üç günde bir enjekte edilerek) ve folinik asit (400  μ g günde iki kez) tedavi [ 88 ]. Başka bir çalışmada, ubiquinolün çocuklarda (3-6 yaş) davranış, yeme ve uyku bozuklukları gibi OSB ile ilgili sorunları iyileştirdiği bildirilmiştir.89 ].

              Metilkobalamin ve folinik asit, tetrahidrobiopterinin (BH4) sentetik bir formu olan sapropterin ile kombinasyon halinde de çalışılmıştır [ 90 ]. Bu takviyeler, folat, metilasyon ve glutatyon yollarını etkileyerek terapötik potansiyel göstermiştir. Sadece BH4 takviyesinin araştırıldığı, tedavi dozunun 20 mg/kg/gün BH4 olduğu denemeler de vardır. OSB'li çocuklarla yapılan bir deneme, sosyal farkındalık, otistik jestler, hiperaktivite ve uygunsuz konuşmada plaseboya göre önemli gelişmeler olduğunu göstermiştir [ 91 ]. Diğer deneyler, BH4'ün çoklu metabolik yolakta yer aldığını göstermiştir. Bu maddenin redoks durumu, pterin, biyojenik aminler, nitrik oksit veya inflamasyonun iyileştirilmesinde rol oynadığı bildirilmiştir.92 – 95 ]. 4.2. Doğal İlaçlardan Sentetik İlaçlara Geçiş


              Bitki biyoaktif molekülleri, ASD tedavisinde umut verici sonuçlar gösterdi. Bununla birlikte, klinik araştırmaların sayısı sınırlıdır ve bunların hiçbiri OSB veya OSB ile ilişkili bozukluk tedavisi için onaylanmamıştır. Bu nedenle, otizm tedavisinde kullanılan sentetik ilaçlara ek olarak biyoaktif bileşikler ve vitamin/mineral takviyeleri kullanılmaktadır. Otizmin ilaçları genellikle davranış problemlerini, gelişim bozukluklarını, fizyolojik yıkımları ve uyku ve mide-bağırsak sorunları, hipertansiyon ve diyabet gibi birlikte ortaya çıkan diğer psikiyatrik ve tıbbi durumları hedef alır [ 96 , 97 ].

              ADS tedavisinde yaygın olarak risperidon ve aripiprazol gibi antipsikotik ajanlar kullanılmaktadır. DeVane et al. [ 98 ], risperidon veya aripiprazol tedavilerinin otistik bozukluğu olan hastaların Aberrant Davranışını, Kontrol Listesi-İrritabilite puanlarını, davranışlarını ve kilo alımını iyileştirdiğini bildirdi. Risperidonun, Aberrant Behavior Checklist puanları gibi otizmle ilişkili çeşitli problemler ve kilo alımının bir yan etkisi ile davranış problemleri (örneğin, saldırganlık, patlayıcılık, hiperaktivite, sinirlilik, tekrarlama, kendine zarar verme ve sosyal geri çekilme) üzerindeki olumlu etkileri , çeşitli çalışmalarda bildirilmiştir [ 99 – 103]. Aripiprazol, OSB hastalarının tedavisinde de benzer sonuçlar verdi, örneğin davranış bozukluklarında (hiperaktivite, sinirlilik, uyku sorunları, vb.) iyileşmeler, genellikle kilo alımı gibi yan etkiler ve daha yüksek sedasyon ve titreme riski [ 104 – 107] ].

              Risperidon veya aripiprazol, ABD Gıda ve İlaç Dairesi tarafından OSB tedavisi için onaylanan tek ilaçlar olmasına rağmen [ 98 , 108 , 109 ], diğer ruhsal bozuklukları tedavi etmek için geliştirilen bazı ilaçların OSB tedavisinde kullanılabileceğine dair birkaç çalışma yapılmıştır [ 98 , 108 , 109 ]. 67 ]. Örneğin donepezil [ 110 , 111 ], galantamin [ 112 ] ve memantin [ 113 ]Alzheimer hastalığını tedavi etmek için onaylanan ], davranış, iletişim ve sosyal bozukluklar gibi otistik bozuklukları iyileştirdiği bildirildi. Örneğin, hipertansiyon tedavisi için geliştirilen guanfasinin, OSB gibi yaygın gelişimsel bozuklukları (PDD) olan kişilerde bozuklukları iyileştirmede etkili bulunmuştur [ 114 ]. Ancak, metforminin otistik hastalarda kilo alımını kontrol etmede yardımcı olabileceğini gösteren birkaç çalışma vardır [ 115 – 118 ].

              Birkaç başka ilaç araştırılıyor ve bilim adamları tarafından otizmi tedavi etmek için yeni ilaçlar da geliştiriliyor. Örneğin, tek doz suramin (20 mg/kg), fare modellerinde otizm ve şizofreniden kaynaklanan davranış problemlerini iyileştirdi [ 119 ]. Ayrıca Naviaux ve ark. [ 120 ], 20 mg/kg intravenöz suramin infüzyonunun (tek doz) otistik çocuklarda davranış ve dil gibi otizm sendromlarında iyileşmeler sağladığını bildirdi. Ong ve ark. [ 121 ], otizm dahil nörolojik bozuklukların tedavisinde fosfolipaz A2 inhibitörlerinin kullanımını gözden geçirdi.

              Metilfenidat [ 122 , 123 ], sertralin [ 124 , 125 ], atomoksetin [ 126 – 128 ] ve alfa agonistlerinin [ 129 ] bazı yan etkileri olsa da otizm tedavisinde kullanılma potansiyelinin olduğu da bildirilmiştir. duygudurum değişikliği, sinirlilik ve gastrointestinal rahatsızlık gibi.

              Yukarıda bahsedilen antidepresanlar veya antipsikotikler gibi merkezi ilaçlar dışında propranolol, memantin, d-sikloserin ve oksitosin gibi ilaçlar kullanılabilir [ 130 ]. En önemlilerinden biri, çeşitli nöropsikiyatrik bozuklukları iyileştiren yüksek dozlarda öfkeyi engelleyen bir beta-adrenerjik antagonist olan propranolol'dür [ 131 , 132 ]. Denemeler, propranololün kaygı, saldırganlık, kendine zarar verme ve aşırı cinsellik ile ortaya çıkan değişen duygusal durumları iyileştirdiğini göstermiştir [ 133 ].

              Ayrıca, otizm spektrum bozukluğu (ASD) olan kişilerde hipotalamik-hipofiz-adrenal eksende ve dolayısıyla kortizol düzeylerinde bir düzensizlik gözlemlenmiştir [ 134 ]. Bu nedenle, steroid sinyallemesinin düzenlenmesi, OSB ve diğer merkezi sinir sistemi bozukluklarının tedavisi için potansiyel bir terapötik yol olarak önerilmiştir [ 135 ].

              OSB'li hastalarda besin seçiciliği ve seçici yeme alışkanlıkları yaygındır ve eksikliğin kendisi semptomları artırsa da hasta besin eksikliklerinden de muzdarip olabilir. Bu nedenle, gıda takviyeleri genellikle OSB tedavisinin temel unsurları olarak görülür. ASD hastalarında vitamin ve mineral eksiklikleri yaygın olduğu için [ 55 , 136 – 139 ], vitamin-mineral takviyeleri sıklıkla araştırılır [ 140 , 141 ]. Vitamin ve mineral takviyelerine bağlı olarak çeşitli OSB semptomlarında iyileşmeler bildirilmiştir [ 60 , 142 – 145 ]. Öte yandan, Stewart ve ark. [ 146], vitamin ve mineral takviyeleri de dahil olmak üzere diyet takviyesinin, yetersiz besin maddelerini yeterli miktarda sağlayamayacağı veya aşırı alıma neden olabileceği için dikkatli bir şekilde yapılmasını önerdi. Öte yandan, OSB hastaları sıklıkla aynı anda birkaç ilaç ve gıda takviyesi ile tedavi edilir ve aralarındaki etkileşimler iyi bilinmemekte ve istenmeyebilmektedir [ 147 ]. Ek olarak, bu ilaçların yan etkileri hakkında daha kapsamlı araştırmalara hala ihtiyaç duyulmaktadır.

              Git: 5. Otizm Spektrum Hastalığında Bitki-Gıda Türevli Biyoaktif Çalışmalar

              5.1. in vitro çalışmalar


              Mitokondriyal işlev beyin enerji dönüş üzerinde [rolü belirgin olarak CNS için kritiktir 148 ] ve sinir iletisi ve plastisite [için kritik iyonik gradiyentlerin 149 olarak] ve nöral kök hücre proliferasyonu, farklılaşması içinde tutulmasına ve olgunlaşması ve ayrıca dendritik süreçlerin oluşumu, gelişimsel ve sinaptik plastisite ve hücre sağkalımı ve ölümü [ 1 , 150 , 151 ] ASD etiyolojisinde mitokondriyal disfonksiyonun önemini pekiştirir. Mitokondriyal fonksiyonu korumak veya eski haline getirmek için çeşitli fitokimyasallar ortaya çıkarılmıştır ve bunların başında güçlü antioksidan özelliklere sahip polifenoller gelir.

              Birçok bitki ve sebzede yaygın olarak bulunan bir polifenol olan Quercetin, güçlü antioksidan özellikler sergiler ve oksidatif stresi önleyebilir. Araştırmalar, kuersetin ve epigallocatechin-3-gallate'in aktif formunda mitokondride biyolojik olarak biriktiğini ve bunun in vivo olarak ROS temizleme mekanizması yoluyla mitokondri koruyucu etkisinden sorumlu olabileceğini göstermiştir [ 152 , 153 ]. Çalışmalar, resveratrol, kersetin ve hidroksitirosol gibi polifenollerin, proliferatörle aktive olan reseptör koaktivatörü-1 α (PGC-1 α ) gibi birkaç koaktivatörün ve transkripsiyon faktörlerinin uyarılması yoluyla mitokondriyal biyogenez süreci üzerindeki modülatör etkisini ortaya koymuştur [ 153 ].]. Ayrıca, birkaç polifenolün sessiz bilgi düzenlemesi 2 homolog 1'i (SIRT1) in vitro aktive ettiği gösterilmiştir; bu nedenle, PGC-1 a deasetilasyon aracılı aktivasyon yoluyla mitokondriyal biyogenezin potansiyel indükleyicileri olarak giderek daha fazla araştırılmaktadır [ 154 ]. Son zamanlarda, resveratrolün kültürlenmiş endotelyal hücrelerde mitokondriyal biyogenez üzerinde SIRT1/PGC-1 a'ya bağımlı etkiyi uyardığı rapor edilmiştir [ 155 ]. Ayrıca resveratrolün, AMP'ye bağlı protein (AMPK) aktivasyonunu ve artan mitokondri biyogenezini uyararak C2C12 hücrelerinde mitokondriyal performansı olumlu yönde etkilediği ortaya çıkarılmıştır [ 156].]. Sülforafan (izotiyosiyanat), normal kanserli olmayan hücrelerde iskemi veya toksinin neden olduğu hasarlarda mitokondriyal fonksiyonları korudu [ 157 ] ve ayrıca mitokondriyal biyojenezi uyardı [ 158 ]. Quercetin, rutin ve resveratrolün, Caco-2 hücrelerinde mitokondriyal membran potansiyelinde ATP düşüşünü ve indometasinin neden olduğu değişikliği önlediği gösterilmiştir [ 159 ].

              ASD'de glutamat düzensizliği ve toksisite gözlemlenmiştir ve fitokimyasalların değiştirilmiş glutamat metabolizmasının etkisini ortadan kaldırabileceğine dair çok sayıda kanıt vardır. Yeşil çaydan elde edilen polifenollerin, kültürlenmiş kortikal nöronlarda antioksidatif ve antiapoptotik yollar yoluyla glutamat eksitotoksisitesini azalttığı gösterilmiştir [ 160 ]. 2003 yılında Lee ve ark. Scutellaria baicalensis Georgi'den izole edilen polifenoller baicalin, baicalein ve wogonin'in , hücre canlılığında artış, artan hücre içi kalsiyum iyonlarının zayıflaması ve baicalein ile nitrik oksit üretiminin azaltılması yoluyla, primer kültürlenmiş sıçan merkezi nöronlarında glutamat/glukozun neden olduğu nörotoksisiteye karşı koruyucu etkisini ortaya çıkardı. en etkili olmak [ 161]. Ayrıca, kahverengi alg türlerinden izole edilen phlorofucofuroeckol, PC12 hücrelerinde oksidatif stres aracılı mitokondriyal disfonksiyonun modülasyonu yoluyla glutamat kaynaklı nörotoksisiteyi geliştirir [ 162 ].

              Otizm spektrum hastalığında bitki-gıda kaynaklı biyoaktif maddelerle yapılan tüm bu in vitro çalışmalar aşağıda özetlenmiştir. Tablo 2. Tablo 2


              İn vitro çalışmaların özeti.
              kuersetin Jurkat hücreleri Antioksidan özellikler
              Mitokondri koruyucu etki
              [ 152 , 153 ]
              resveratrol endotel hücreleri SIRT1/PGC-1 α'yı uyarın ve mitokondri biyogenezini artırın [ 155 ]
              resveratrol C2C12 hücreleri AMPK aktivasyonu ve mitokondri biyogenezinin artması [ 156 ]
              sülforafan Normal kanserli olmayan hücrelerde indüklenen iskemi Mitokondriyal fonksiyonları korumak ve biyogenezini arttırmak [ 157 , 158 ]
              Quercetin, rutin ve resveratrol İndometasin kaynaklı Caco-2 hücreleri ATP'yi önleyin [ 159 ]
              Yeşil çay polifenolleri kortikal nöronlar Antioksidatif ve antiapoptotik özellikler [ 160 ]
              S. baicalensis'ten izole edilen baicalin, baicalein ve wogonin Birincil kültür sıçan merkezi nöronları Antioksidatif özellikler, artan hücre canlılığı, azaltılmış hücre içi kalsiyum iyonları ve nitrik oksit üretimi [ 161 ]
              florofikofuroekkol PC12 hücrelerinde glutamat kaynaklı toksisite Mitokondriyal disfonksiyonun iyileştirilmesi [ 162 ]
              5.2. Canlı Çalışmalar


              OSB tarafından tetiklenen ve sosyal eksiklikler, iletişim bozukluğu ve bilişsel esneklik eksiklikleri ile karakterize edilen hızla büyüyen engelliler göz önüne alındığında, McKinnell ve ark. 2021'de VPA otizm ve kontrol modelinde kemirgen davranışındaki (sosyal ve kaygı) ve bilişsel esneklikteki değişiklikleri değerlendirdi. Sonuçlar, VPA sıçanlarının set değiştirme görevini yerine getirmede kayıp gösterdiğini gösterdi. Başka bir deyişle, OSB'li kadınlar, OSB'li erkeklere kıyasla benzersiz davranış profili sergilediler [ 163]. 2021'de Rebolledo-Solleiro ve ark. sistematik bir inceleme yoluyla bisfenol A'nın (BPA) davranış, nörogelişim ve nörodejenerasyon üzerindeki etkisini inceledi. Yazarlar, ana bulguları olarak, BPA'nın üreme sistemi, metabolizma ve beyin işlevlerinin normal işleyişini modüle ettiğini ve OSB dahil birkaç nörogelişimsel bozukluğun gelişimini tetiklediğini vurguladılar [ 164 ].

              Benzer şekilde, ASD yönetimi için artan miktarda doğal olarak oluşan biyoaktif bileşikler kullanılmıştır. Bunlar arasında, Camellia sinensis (yeşil çay), epigallokateşin-3-gallat, epigallokateşin, epikateşin-3-gallat ve baskın olanlar gibi kateşinler ile polifenollerin, özellikle flavonoidlerin önemli bir diyet kaynağıdır. Bununla birlikte, kaempferol, mirisetin ve kersetin gibi gallik, klorojenik ve kafeik asitler ve flavonol türevlerinin varlığı belirtilmiştir [ 165 , 166 ]. Yeşil çaydan flavonoid özü ile tedavi edilen otistik farelerde davranışsal değerlendirmelerde ve nöro-korumada ve düşük oksidatif streste önemli iyileşme gözlendi [ 166]. Ayrıca, histolojik bulgular, yeşil çay ile tedaviden sonra belirgin bir Purkinje tabakası ve hücrelerinin varlığını ortaya çıkardı, bu da onun nöro-koruyucu etkisini düşündürdü [ 166 ]. Sıçan modellerinde otistik davranışın yönetiminde bitki özlerinin (yeşil çay ve karabiber) olumlu etkisi aşağıdaki şekilde gösterilmiştir.Figür 3.
              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı OMCL2021-1131280.003.jpg
              Figür 3
              Sıçan modelinde otistik davranışın yönetiminde bitki özlerinin (yeşil çay ve karabiber) olumlu etkisi.

              Ayrıca, Piper longum L. ve Piper nigrum L.'de (karabiber) bulunan ana alkaloid olan piperin'in antioksidan, nöroprotektif, anksiyolitik ve biliş artırıcı etkilere sahip olduğu bildirilmiştir [ 167 – 169 ]. Önceki bir çalışma, sodyum valproat ile indüklenen serebellar hasarı hafifletme yeteneğinden dolayı, geliştirilmiş/restore edilmiş motor eksiklikleri ve azalan yeniden oryantasyon süresi ile açıklandığı üzere, ASD murin modelinde piperinin davranış değişiklikleri ve oksidatif stres belirteçleri üzerindeki iyileştirici etkilerini ortaya çıkarmıştır [ 170 ]. Piperin tedavisi ayrıca serebral korteks ve limbik sistemle bağlantılı Purkinje hücre sayısında azalma yoluyla beyincik bütünlüğünün restorasyonunu da sağladı [ 170]. Bu özellikler ve anti-inflamatuar, antioksidan ve nöroprotektif etkiler için resveratrol, OSB tedavisinde de alakalı olabilir [ 171 , 172 ].

              Deneysel bir fare modelinde yapılan bir çalışma, resveratrolün valproik asit kaynaklı otistik sıçanlarda sosyal becerileri geliştirdiğini ortaya koydu. Bu pro-enflamatuar moleküllerin (IL-6 ve TNF-a azaltılması, transkripsiyon faktörü sinyal düzenleyerek nöro-immünomodülatör etkileri göstermektedir da düzenler ve Sirtuins, sınıf III histon deasetilazların elemanları harekete geçirmekte ve α NF inhibe dopaminerjik nöronlarda) κ B aktivasyonunu ve T hücrelerinin baskılanması [ 80 , 173 ]. Bir başka çalışma, resveratrolün propanoik asit ile indüklenen otistik sıçanlarda nöroinflamasyonu, mitokondriyal disfonksiyonu, oksidatif/nitrozatif stresi ve TNF- α ekspresyonunu baskıladığını bildirdi [ 81].], böylece onu OSB'nin nörodavranışsal ve biyokimyasal değişikliklerini iyileştirmek için potansiyel bir terapötik ajan haline getirir [ 81 ].

              Zerdeçalın nörodejeneratif hastalıklar ve nöropsikiyatrik bozukluklar üzerindeki etkisi de belgelenmiştir. Zerdeçalda bulunan ana kurkuminoid olan kurkumin (diferuloil metan), kan-beyin bariyerine nispeten toksik olmayan ve geçirgen bir bileşik [ 174 , 175 ], birkaç hücre sinyalini hedef aldığı için otistik sıçanların tedavisi üzerinde olumlu etkileri olduğu rapor edilmiştir. yollar. Örneğin, hücre içi GSH seviyelerini arttırır, inflamatuar bileşenleri azaltır ve mitokondriyal disfonksiyonu ve oksidatif/nitrozatif stresi ve ayrıca protein agregasyonunu azaltır [ 73 , 176]]. Bu çalışma ayrıca, kurkuminin propanoik asit ile indüklenen otistik sıçanlarda oksidatif-nitrozatif stresi ve mitokondriyal disfonksiyonu baskılayarak otistik fenotiple ilişkili semptomları hafifletebileceğini göstermiştir [ 73 ]. Ek olarak kurkumin, otistik bir hayvan modelinde ASD fenotipiyle ilgili değiştirilmiş nörolojik, davranışsal, biyokimyasal ve moleküler değişikliklerin restorasyonu yoluyla gecikmiş beyin olgunlaşmasını ve beyin toksisitesini iyileştirebilir [ 73 , 74 ].

              Bacosides, Hint kabileleri tarafından yaygın olarak kullanılan tıbbi maddelerdir ve Bacopa monnieri (L.) Wettst [ 177 ]' den ekstrakte edilen başlıca biyoaktif bileşiklerdir . Bu bitki, geleneksel olarak, zeka ve biliş geliştirici özelliklerinin yanı sıra bir sinir toniği olmasıyla bilinir [ 178 , 179 ]. B. monnieri'nin farmakolojik özellikleri, onu oluşturan alkaloidler, saponinler ve sterollere atfedilmiştir [ 180 ]. B. monnieribir otizm modelinde davranışsal değişiklikleri önemli ölçüde iyileştirdi, oksidatif stres belirteçlerini azalttı, ağrı eşiğini düşürdü ve lokomotor eksiklikleri ve ayrıca kaygıyı normalleştirdi. Lokomotif aktivitedeki iyileşme, B. monnieri'nin antianksiyete özelliklerine ve birikmiş glutamatı azaltma ve serebellum yapısını onarma yeteneğine bağlandı [ 181 ].

              Ginsenosid açısından zengin ekstrenin uzun süreli, günlük oral uygulamasının fare modellerinde sosyal etkileşimi, tekrarlayan davranışları, lokomotor aktiviteyi ve diğer OSB ile ilgili davranışları iyileştirdiği bulunmuştur [ 83 ]. Bu nedenle, ginsenosid, ASD ile ilişkili fenotipler ve semptom yönetiminin yanı sıra nörodavranışsal eksiklikler için olası bir ilaç adayı olarak görülebilir. Ginsenosidler, serebral kan akışında iyileşme, nöronal plastisitenin uyarılması, öğrenme, hafıza ve bilişin yanı sıra CNS ile ilişkili hastalık tedavisi gibi terapötik özellikleri ile bilinen Kore kırmızı ginsengi ( Ginkgo biloba L.) fito-bileşenleridir [ 182 – 184]. Ek olarak, bu bitkinin antistres, nöroprotektif, antiinflamatuar ve antioksidan özelliklere sahip olduğu bildirilmiştir [ 85 , 185 ].

              Ayrıca, bir ASD fare modelinde ultramikronize lipid molekülü N-palmitoiletanolamidin (PEA) luteolinle (co-ultra-PEA-LUT) etkisi, nitrotirozin ve nükleer faktör kappa B (NF) gibi proinflamatuar moleküllerde bir azalmayı ortaya çıkardı. - κ B), co-ultra-PEA-LUT ile tedaviyi takiben nöroplastisite ve nörogenezde bir gelişme ve çeşitli beyin bölgelerinde (serebellum ve hipokampus) apoptotik mekanizmanın modülasyonu [ 186 ]. Başka bir çalışma, BTBR T+tf/J farelerinin otistik davranışı üzerinde PEA'yı değerlendirdi ve katkıda bulunan mekanizmalara ışık tuttu [ 187 ]. PEA, PPAR- a'ya bağlı olarak BTBR farelerinin davranışsal fenotipini geliştirdiaktivasyon. PEA, hipokampal BDNF sinyal yolunu ve mitokondriyal disfonksiyonu restore etti ve farelerin genel inflamatuar durumunu azalttı, hipokampal, serum ve kolonik seviyelerde proinflamatuar sitokinlerin ekspresyonunu azalttı. Ayrıca kolonun sıkı bağlantılarının ifadesini ve bağırsak mikrobiyotasının bileşimini artırarak bağırsak geçirgenliğini de iyileştirdi.

              ASD'de bitki-gıda kaynaklı biyoaktif maddelerle yapılan tüm bu in vivo çalışmalar şurada özetlenmiştir: Tablo 3. Tablo 3


              İn vivo çalışmaların özeti.
              Bisfenol A Farklı ASD hayvan modelleri Üreme sistemi, metabolizma ve beyin işlevlerinin işlevini modüle eder [ 164 ]
              Yeşil çay ASD fare modeli Nöroprotektif ve antioksidan özellikler ve davranışların iyileştirilmesi [ 166 ]
              piperin ASD fare modeli Antioksidan, nöroprotektif, anksiyolitik ve biliş artırıcı etkiler [ 167 – 169 ]
              resveratrol VPA ile indüklenen ASD sıçanları Sirtuinleri aktive eder ve IL-6, TNF- α , NF- κ B ve T hücrelerini azaltır [ 80 , 173 ]
              resveratrol Propanoik asit kaynaklı ASD sıçanları Nöroinflamasyonu, mitokondriyal disfonksiyonu ve oksidatif/nitrozatif stresi azaltır [ 81 ]
              kurkumin OSB fareleri GSH seviyelerini arttırır ve inflamasyonu, mitokondriyal disfonksiyonu ve oksidatif/nitrozatif stresi azaltır. [ 73 , 176 ]
              B. monnieri ASD fare modeli Davranışın ve antioksidan, anksiyolitik ve analjezik özelliklerin iyileştirilmesi [ 181 ]
              Ginsenosid açısından zengin özü ASD fare modeli Davranış ve lokomotor aktivitenin iyileştirilmesi [ 83 ]
              Co-ultra-PEA-LUT ASD fare modeli Proinflamatuar belirteçleri (nitrotirozin ve NF- κ B) azaltır , nöroplastisiteyi ve nörojenezi iyileştirir ve apoptozu modüle eder [ 186 ]
              BEZELYE BTBR T+tf/J fareler Mitokondriyal disfonksiyonu ve inflamatuar etkileri azaltır
              Davranışta iyileşme, PPAR- α aktivasyonu
              Mikrobiyota-bağırsak-beyin ekseni regülasyonu
              [ 187 ]
              PEA: N-palmitoiletanolamid; co-ultra-PEA-LUT: luteolin ile ultramikronize N-palmitoiletanolamid. 5.3. Klinik çalışmalar


              ASD'nin hastaların sağlığı, esenliği ve yaşam kalitesi üzerindeki büyük etkisi ve çeşitli hastalıkların hem önlenmesinde hem de yönetiminde diyetin rolüne dair artan kanıtlarla karşı karşıya kalan Hartman ve Patel, gıda yaklaşımlarına ilişkin çok sayıda raporu gözden geçirdi. ASD yönetimi ve bunların gıda takviyeleri (yağ asidi ve pro- ve prebiyotikler, vitaminler, mineraller, fitokimyasallar ve hormonlar) aracılığıyla gastrointestinal, davranışsal, nörolojik ve bağışıklık işlevleriyle ilişkisi [ 188 ]. Temel ifadeleri olarak, gastrointestinal sorunlar, gıda yaklaşımlarının OSB'li hastaların yaşamlarını iyileştirebilmesiyle birlikte, bir dizi davranışsal ve nörolojik defisit ile ilişkilendirildi [ 188]. Başka bir çalışmada, Gogou ve Kolios, hamilelik sırasında gıda uygulamasının OSB yavrularının riski üzerindeki etkisini bildirmiştir. Bu çalışmada yazarlar hem klinik hem de deneysel çalışmalara yer vermiş ve ayrıca gıda takviyesi (yani folik asit, demir, vitaminler, kolin, D vitamini ve dokosaheksaenoik asit) çalışmalarına da yer verilmiştir [ 189 ]. Kolin, folik asit ve multivitaminleri içeren gıda takviyeleri, ASD ile ilgili genlerin ekspresyonu üzerinde önemli bir etkiye sahipken, demirin hiçbir etkisi olmadı. Bu nedenle, uygun miktarda multivitamin, D vitamini ve dokosaheksaenoik asit, yavrularda OSB riskinin azaltılmasına yardımcı olabilir [ 189 ]. İnfante et al. OSB'li 23 yaşındaki genç yetişkin bir erkekle ilgili bir vaka çalışması bildirdi. Omega-3 ve D vitamini kombinasyon tedavisi hastaya faydalı etkiler gösterdi [190 ]. Ayrıca, Sivamaruthi ve ark. OSB'nin gelişiminde mikrobiyomun, gıda takviyelerinin ve probiyotiklerin rolünü değerlendirdi ve annenin diyeti ve yaşam tarzının OSB'nin gelişimi ile büyük ölçüde ilişkili olduğunun altını çizdi [ 191 ].

              2017 yılında Wink ve ark. kısa OSB yemek zamanı davranış envanteri (BAMBI) ve davranış pediatrik beslenme değerlendirme ölçeğini kullanarak, ASD'si olan ve olmayan gençlerde, metforminin antipsikotikle ilişkili kilo alımı üzerindeki uzun vadeli etkisini tanımlamıştır [ 118 ]. Yazarlar, metformin tedavisinin BMI z- skorunu stabilize ettiğini ve BAMBI'nin iyi tutarlılık, test-tekrar test güvenilirliği ve ölçütle ilgili güvenilirlik gösterdiğini belirtmişlerdir. 2001 yılında Ahearn ve ark. OSB ve başka türlü tanımlanmamış (PDD-NOS) yaygın gelişimsel bozukluğu olan çocuklarda (3-14 yaş; 6 seansta 12 gıda maddesine maruz kalan) beslenme davranışı hakkında rapor edilmiştir [ 192]. Yiyecek kabulü, sınır dışı etme ve yıkıcı davranış gibi farklı parametreler, deneme bazında kaydedildi ve elde edilen veriler, bazı çocukların yiyecek dokusuna veya kategorisine duyarlı olduğunu, diğerlerinin ise kayıtsız olduğunu açıkça gösterdi.

              Ek olarak, ASD'de bitki kaynaklı biyoaktif moleküllerin kullanımını bildiren klinik kanıtlara bakıldığında, farklı biyomoleküllerin anti-inflamatuar, antioksidan, antialerji ve nöroprotektif etkileri iyi belgelenmiştir. Mostafavi ve Gaitanis, OSB tedavisinde esrar ve kannabidiol kullanımına ilişkin klinik öncesi ve klinik verileri içeren bir veri setini analiz ettiler [ 193 ]. Analizin sonuçları, her iki bileşiğin de ASD'li bazı kişilerde umut verici terapötik faydalar ortaya koyduğunu ortaya koydu.

              Spesifik bileşikler söz konusu olduğunda, Chamomile sp.'den ekstrakte edilen luteolin ve kersetin . ve Sophora sp. OSB'li çocuklarda yapraklar kullanılmış ve OSB semptomlarında belirgin düzelmeler olduğu belirtilmiştir. Hastaların çoğu (%75) dışkı şekli, kokusu, şekli ve rengi gibi gastrointestinal özelliklerde önemli bir iyileşme bildirmiştir. Çocukların yaklaşık %50'sinde, 2 ila 3 haftalık bir süre içinde alışkanlıklar düzeldi ve “alerjik benzeri” cilt semptomları da önemli ölçüde azaldı. Göz teması ve dikkat de hastaların yaklaşık %50'sinde düzeldi. Ek olarak, hastaların %30-50'si öğrenilmiş görevler ve sosyal etkileşimler gösterdi ve çocukların yaklaşık %10'u kelimeler veya kısa cümleler konuşmaya başladı. Bununla birlikte, hiperaktivite veya saldırganlık için hiçbir gelişme kaydedilmedi [ 194]. 2013 yılında Taliou ve ark. Chamomile sp.'den ekstrakte edilen luteolin, kersetin ve rutin ile tedavi edildiğinde, otistik çocukların yaklaşık %26,6-%34.8'inde adaptif işlevlerde ve genel davranışlarda bir iyileşme bildirmiştir . ve Sophora sp. bırakır [ 77 ]. Başka bir klinik çalışmada, eş-ultra-PEA-LUT, OSB ile ilişkili semptomlarda bir iyileşmeye ve motor stereotiplerin azalmasına yol açmıştır [ 186 ]. PEA ile yapılan başka bir çalışma, OSB'li iki çocuk hastada bu tedavinin yararlı etkilerini gösterdi [ 195]. Bu denekler, önemli ölçüde gelişmiş bilişsel yönler, ifade edici dil ve sosyalliğin yanı sıra otizmin genel ciddiyetini gösterdi. Ayrıca, G. biloba yapraklarından ekstrakte edilen bir flavonoid bileşeni ile tedaviyi takiben sinirlilik, hiperaktivite, göz teması ve konuşmada hafif iyileşmeler gözlemlendi [ 84 ].

              ASD'de bitki-gıda kaynaklı biyoaktif maddelerle ilgili tüm bu klinik çalışmalar şurada özetlenmiştir: Tablo 4. Tablo 4


              Klinik çalışmaların özeti.
              Kolin, folik asit ve multivitaminler dahil gıda takviyeleri hamile hasta ASD ile ilgili genlerin azaltılmış ifadesi [ 189 ]
              Omega-3 ve D vitamini OSB hastası vaka çalışması Azaltılmış ASD semptomu [ 190 ]
              metformin OSB yetişkin hastalar Stabilize BMI z- skoru [ 118 ]
              Esrar ve kenevir OSB yetişkin hastalar Azaltılmış ASD semptomu [ 193 ]
              Luteolin ve kersetin OSB'li çocuklar Gastrointestinal özelliklerde, göz temasında ve dikkat sosyal etkileşimlerinde iyileşme [ 194 ]
              Luteolin, kersetin ve rutin OSB'li çocuklar Uyarlanabilir işlevsellikte ve genel davranışta iyileşme [ 77 ]
              Co-ultra-PEA-LUT OSB yetişkin hastalar Azaltılmış motor stereotipler, kaygı ve sosyal becerilerde kötüleşme [ 186 ]
              BEZELYE OSB'li çocuklar Bilişsel yönlerin, ifade edici dilin ve sosyalliğin iyileştirilmesi
              Otizmin genel şiddetinde azalma
              [ 195 ]
              G. biloba'dan ekstrakte edilen flavonoid bileşeni OSB yetişkin hastalar Sinirlilik, hiperaktivite, göz teması ve konuşmada hafif iyileşmeler [ 84 ]
              Git: 6. Sonuçlar ve Yaklaşan Perspektifler


              Bitki biyoaktif molekülleri, ASD tedavisinde umut verici sonuçlar gösterdi. Bununla birlikte, şu ana kadar çok az sayıda klinik çalışma mevcuttur ve bunların hiçbiri OSB veya OSB ile ilişkili bozukluğun tedavisi için onaylanmamıştır. Bu nedenle, ASD tedavisinde ilaç keşif adayları olarak bitki kaynaklı biyoaktiflerin daha derinlemesine anlaşılması için daha fazla klinik öncesi ve klinik çalışmalara ihtiyaç vardır.

              Git: Teşekkür


              NC-M. Horizon 2020 Programı (PTDC/PSI-GER/28076/2017) kapsamında Portekiz Bilim ve Teknoloji Vakfı'nı kabul eder.

              Git: Çıkar çatışmaları


              Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

              Git: Yazar katkıları


              Tüm yazarlar yazıya katkıda bulunmuştur. JS-R., NC-M. ve WCC kavramsallaştırmada yer aldı. Tüm yazarlar, makalenin doğrulanması, araştırılması, kaynak edinimi, veri küratörlüğü ve yazımı ile ilgilendi. CQ, I.-CB, MB, FS, NC-M., JSR, VL, MMA, WCC ve FL, gözden geçirme ve düzenlemede yer aldı. Tüm yazarlar makalenin bu versiyonunu okudu ve yayınlamayı kabul etti.

              Git: Referanslar

              1. Cheng N., Rho JM, Masino SA Otizm spektrum bozukluğunun altında yatan metabolik işlev bozukluğu ve potansiyel tedavi yaklaşımları. Moleküler Sinirbilimde Sınırlar . 2017; 10 :s. 34. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              2. Mazahery H., Stonehouse W., Delshad M., et al. Uzun Zincirli n-3 Çoklu Doymamış Yağ Asitleri ve Otizm Spektrum Bozukluğu Arasındaki İlişki: Vaka Kontrol ve Randomize Kontrollü Denemelerin Sistematik İncelemesi ve Meta-Analiz. Besinler . 2017; 9 (2):s. 155. doi: 10.3390/nu9020155. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              3. Organizasyon, WH Otizm Spektrum Bozuklukları . 2021.
              4. Yang XL, Liang S., Zou MY, et al. Otizm spektrum bozukluğunun davranışsal belirtileri ile gastrointestinal ve uyku sorunları ilişkili midir? Psikiyatri Araştırması . 2018; 259 :229–235. doi: 10.1016/j.psychres.2017.10.040. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              5. Rose DR, Yang H., Serena G., et al. Otizm spektrum bozuklukları ve eşlik eden gastrointestinal semptomları olan çocuklarda farklı immün yanıtlar ve mikrobiyota profilleri. Beyin, Davranış ve Bağışıklık . 2018; 70 :354–368. doi: 10.1016/j.bbi.2018.03.025. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              6. Grayaa S., Zerbinati C., Messedi M., et al. Çocuklarda plazma oksisterol profili, Otizm Spektrum Bozuklukları için potansiyel bir belirteç olarak 24-hidroksikolesterolü ortaya çıkarır. Biyokimya . 2018; 153 :80–85. doi: 10.1016/j.biochi.2018.04.026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              7. Haas RH Otizm ve mitokondriyal hastalık. Gelişimsel engelli araştırma incelemeleri . 2010; 16 (2):144–153. doi: 10.1002/ddrr.112. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              8. Goodenowe D., Pastural E. Otistik davranış ve patolojinin biyokimyasal temeli. Otizm—Genlerden Davranışa Nörogelişimsel Bir Yolculuk . 2011. http://www.intechopen.com/books/auti...-and-pathology .
              9. Morris G., Berk M. Nöroimmün ve nöropsikiyatrik bozukluklarda mitokondriyal disfonksiyona giden birçok yol. BMC Tıp . 2015; 13 (1):s. 68. doi: 10.1186/s12916-015-0310-y. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              10. Goines P., Haapanen L., Boyce R., et al. Otizmli çocuklarda serebelluma karşı otoantikorlar davranışla ilişkilidir. Beyin, davranış ve bağışıklık . 2011; 25 (3):514–523. doi: 10.1016/j.bbi.2010.11.017. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              11. Onore C., Careaga M., Ashwood P. Otizm patofizyolojisinde immün disfonksiyonun rolü. Beyin, davranış ve bağışıklık . 2012; 26 (3):383-392. doi: 10.1016/j.bbi.2011.08.007. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              12. Morgan JT, Chana G., Pardo CA, et al. Otizmde dorsolateral prefrontal kortekste gözlenen mikroglial aktivasyon ve artan mikroglial yoğunluk. Biyoloji Psikiyatrisi . 2010; 68 (4):368–376. doi: 10.1016/j.biopsych.2010.5.024. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              13. Li X., Chauhan A., Şeyh AM, et al. Otistik hastaların beyninde yüksek bağışıklık tepkisi. Dergi Nöroimmünoloji . 2009; 207 (1-2):111–116. doi: 10.1016/j.jneuroim.2008.12.002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              14. Perrin JM, Coury DL, Hyman SL, Cole L., Reynolds AM, Clemons T. Büyük bir pediatrik otizm örneğinde tamamlayıcı ve alternatif tıp kullanımı. Pediatri . 2012; 130 :77-82. [ PubMed ] [ Google Akademik ]
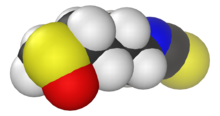
              15. Winburn E., Charlton J., McConachie H., et al. Otizm spektrum bozukluğu olan çocuklara yönelik diyet müdahalelerine yönelik ebeveyn ve çocuk sağlığı profesyonellerinin tutumları. Otizm ve gelişimsel bozukluklar dergisi . 2014; 44 (4):747-757. doi: 10.1007/s10803-013-1922-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              16. Ornoy A., Weinstein-Fudim L., Ergaz Z. Otizm spektrum bozukluğu (ASD) ile ilişkili doğum öncesi faktörler Reprodüktif toksikoloji (Elmsford, NY) 2015; 56 :155–169. doi: 10.1016/j.reprotox.2015.05.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              17. Jamain S., Betancur C., Giros B., Leboyer M., Bourgeron T. La génétique de l'autisme. Tıp bilimleri : M/S . 2003; 19 (11):1081–1090. doi: 10.1051/medsci/200319111081. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              18. Alonso-Gonzalez A., Rodriguez-Fontenla C., Carracedo A. Otizm spektrum bozukluğunda (ASD) de novo mutasyonlar (DNM'ler): yol ve ağ analizi. Genetikte sınırlar . 2018; 9 :s. 406. doi: 10.3389/fgene.2018.00406. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              19. Woodbury-Smith M., Scherer SW Otizm spektrum bozukluğunun genetiğinde ilerleme. Gelişimsel tıp ve çocuk nörolojisi . 2018; 60 :445–451. doi: 10.1111/dmcn.13717. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              20. Colvert E., Tick B., McEwen F., et al. İngiltere popülasyonuna dayalı bir ikiz örnekleminde otizm spektrum bozukluğunun kalıtsallığı. JAMA Psikiyatri . 2015; 72 (5):415–423. doi: 10.1001/jamapsikiyatri.2014.3028. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              21. Helsmoortel C., Vulto-van Silfhout AT, Coe BP, et al. ADNP'deki de novo mutasyonların neden olduğu SWI/SNF ile ilişkili bir otizm sendromu. Doğa genetiği . 2014; 46 :380–384. doi: 10.1038/ng.2899. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              22. Rosenberg RE, Law JK, Yenokyan G., McGready J., Kaufmann WE, Law PA 277 ikiz çift arasında otizm spektrum bozukluklarının özellikleri ve uyumu. Pediatri ve Ergen Tıbbı Arşivleri . 2009; 163 :907-914. doi: 10.1001/archpediatrics.2009.98. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              23. Ramaswami G., Geschwind DH Otizm spektrum bozukluğunun genetiği. Klinik nöroloji el kitabı . 2018; 147 :321–329. doi: 10.1016/b978-0-444-63233-3.00021-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              24. Modabbernia A., Velthorst E., Reichenberg A. Otizm için çevresel risk faktörleri: sistematik incelemelerin ve meta-analizlerin kanıta dayalı bir incelemesi. Moleküler otizm . 2017; 8 :s. 13. doi: 10.1186/s13229-017-0121-4. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              25. Kinney DK, Barch DH, Chayka B., Napoleon S., Munir KM Otizm için çevresel risk faktörleri: bozukluğa katkıda bulunan de novo genetik mutasyonlara neden oluyorlar mı? Tıbbi hipotezler . 2010; 74 :102–106. doi: 10.1016/j.mehy.2009.07.052. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              26. Hamza M., Halayem S., Mrad R., Bourgou S., Charfi F., Belhadj A. Epigenetics'in otizm spektrum bozukluklarındaki etkisi: bir derleme. L'Encephale . 2017; 43 :374–381. doi: 10.1016/j.encep.2016.07.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              27. Wiśniowiecka-Kowalnik B., Nowakowska BA Otizm spektrum bozukluğunun genetiği ve epigenetiği—alandaki güncel kanıtlar. Uygulamalı genetik dergisi . 2019; 60 :37-47. doi: 10.1007/s13353-018-00480-w. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              28. Waye MMY, Cheng HY Otizmin genetiği ve epigenetiği: bir inceleme. Psikiyatri ve klinik sinirbilimleri . 2018; 72 :228–244. doi: 10.1111/pcn.12606. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              29. Al-Gadani Y., El-Ansary A., Attas O., Al-Ayadhi L. Suudi otistik çocuklarda oksidatif stres ve antioksidan durumu ile ilgili metabolik biyobelirteçler. Klinik Biyokimya . 2009; 42 :1032-1040. [ PubMed ] [ Google Akademik ]
              30. Bowers K., Li Q., ​​Bressler J., Avramopoulos D., Newschaffer C., Fallin MD Glutatyon yolu gen varyasyonu ve otizm spektrum bozuklukları riski. Nörogelişimsel bozukluklar dergisi . 2011; 3 :132–143. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              31. Chauhan A., Chauhan V. Otizmde oksidatif stres. Patofizyoloji . 2006; 13 :171–181. [ PubMed ] [ Google Akademik ]
              32. Kern JK, Jones AM Otizmde toksisite, oksidatif stres ve nöronal hasar kanıtı. Toksikoloji ve Çevre Sağlığı Dergisi . 2006; 9 :485–499. [ PubMed ] [ Google Akademik ]
              33. Kanner L. Duygulanımsal temasın otistik bozuklukları. Sinirli Çocuk . 1943; 2 :217–250. [ Google Akademik ]
              34. Rutter M. Çocukluk otizminin teşhisi ve tanımı. Otizm ve Çocukluk Şizofreni Dergisi . 1978; 8 :139-161. [ PubMed ] [ Google Akademik ]
              35. WHO. Zihinsel ve Davranışsal Bozuklukların ICD-10 Sınıflandırması: Araştırma için Tanı Kriterleri . Dünya Sağlık Örgütü; 1993. [ Google Akademik ]
              36. Williams JM, Freeman W. Lobotominin çocuklara özel referansla değerlendirilmesi. Araştırma yayınları-Sinir ve Ruh Hastalıkları Araştırma Derneği . 1953; 31 :311–318. [ PubMed ] [ Google Akademik ]
              37. Miller A. Lobotomi hastası—on yıl sonra: 1948'de başlayan bir araştırma projesinin takip çalışması. Kanada Tıp Derneği Dergisi . 1967; 96 :1095–1103. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              38. Cunningham MA, Dixon C. Otistik bir çocuğun dili üzerine bir çalışma. Dergi Çocuk Psikolojisi Psikiyatrisi . 1961; 2 : :193–202. [ PubMed ] [ Google Akademik ]
              39. Welch M. Anne-çocuk tutma terapisi yoluyla otizmden kurtulma. İçinde: Tinbergen N., Tinbergen EA, editörler. Otistik Çocuklar: Bir Tedavi İçin Yeni Bir Umut . Londra: Allen & Unwin; 1983. s. 322-326. [ Google Akademik ]
              40. FDA. Yeni Pediatrik Etiketleme Bilgi Veritabanı. https://www.accessdata.fda.gov/scrip...=false&page=10 .
              41. Hertz-Picciotto I., Delwiche L. Otizmdeki artış ve tanı yaşının rolü. Epidemiyoloji (Cambridge, Mass) 2009; 20 :s. 84. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              42. Fernández MJF, Valero-Cases E., Rincon-Frutos L. Akıl hastalıklarının terapötik yaklaşımında kullanılma potansiyeli olan gıda bileşenleri. Güncel farmasötik biyoteknoloji . 2019; 20 :100–113. [ PubMed ] [ Google Akademik ]
              43. Christensen DL, Braun KVN, Baio J., et al. 8 yaşındaki çocuklar arasında otizm spektrum bozukluğunun yaygınlığı ve özellikleri – otizm ve gelişimsel engelli izleme ağı, 11 site, Amerika Birleşik Devletleri, 2012. MMWR Gözetim Özetleri . 2018; 65 :1–23. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              44. Öztan Ö., Jackson LP, Libove RA, et al. Otizmli çocuklarda hastalık durumu ve semptom şiddeti için biyobelirteç keşfi. Psikonöroendokrinoloji . 2018; 89 :39-45. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              45. Eisenberg DM, Davis RB, Ettner SL, et al. Amerika Birleşik Devletleri'nde alternatif tıp kullanımındaki eğilimler, 1990-1997 takip eden bir ulusal anketin sonuçları. JAMA . 1998; 280 :1569–1575. doi: 10.1001/jama.280.18.1569. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              46. Costello E. Tamamlayıcı ve alternatif tedaviler: uluslararası evlat edinme sonrasında aileler için düşünceler. Çocuk Klinikleri . 2005; 52 :1463–1478. doi: 10.1016/j.pcl.2005.06.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              47. Guo QY, Ebihara K., Shimodaira T., et al. Kami-shoyo-san, bir SKF fare otizm modelinde allopregnanolone biyosentezinin azalmasının neden olduğu ASD benzeri davranışları iyileştiriyor. PLoS Bir . 2019; 14 :s. 15. doi: 10.1371/journal.pone.0211266. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              48. Wake R., Miyaoka T., Furuya M., Hashioka S., Horiguchi J. Otizm spektrum bozukluğu ile ilişkili semptomlar için bir Japon Kampo ilacı olan Yokukansan'ın etkileri. Nörolojik Bozukluklar-İlaç Hedefleri (Önceden Güncel İlaç Hedefleri-CNS ve Nörolojik Bozukluklar) 2016; 15 :551-563. doi: 10.2174/1871527315666160413120541. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              49. Daley TC Yaygın gelişimsel bozukluklar üzerine kültürler arası araştırma ihtiyacı. Transkültürel Psikiyatri . 2002; 39 :531–550. doi: 10.1177/136346150203900409. [ CrossRef ] [ Google Akademik ]
              50. Jithesh M. Panchagavya gritha—ayurvedik psikiyatride umut vadeden bir ilaç. Asya Farmasötik Araştırma ve Geliştirme Dergisi . 2013; 1 :7–15. [ Google Akademik ]
              51. Wong VCN Otizm spektrum bozukluğunda (ASD) tamamlayıcı ve alternatif tıbbın (CAM) kullanımı: Çin ve batı kültürünün karşılaştırılması (Bölüm A) Otizm ve gelişimsel bozukluklar dergisi . 2009; 39 :454-463. doi: 10.1007/s10803-008-0644-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              52. Cheng FK Akupunkturun otizm üzerindeki etkilerinin çeşitli ve kombine yöntemlerle araştırılması. Güncel Geleneksel Tıp . 2017; 3 :14–28. doi: 10.2174/2215083803666170217135249. [ CrossRef ] [ Google Akademik ]
              53. Kong FS, Hu D., Yuan Q., Zhou W., Li PP Otizm spektrum bozukluğu olan çocuklarda akupunkturun etkinliği. Uluslararası Klinik ve Deneysel Tıp Dergisi . 2018; 11 :13775–13780. [ Google Akademik ]
              54. Wong VCN, Chen WX, Liu WL Otizm spektrum bozukluğu için elektro-akupunkturun randomize kontrollü denemesi. Alternatif Tıp İnceleme . 2010; 15 :136–146. [ PubMed ] [ Google Akademik ]
              55. Bicer AH, Alsaffar AA Otizm Spektrum Bozukluğu (OSB) Olan Türk Çocukların Beden Kitle İndeksi, Diyet Alımları ve Beslenme Sorunları Gelişimsel Yetersizlik Araştırması . 2013; 34 :3978–3987. doi: 10.1016/j.ridd.2013.08.024. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              56. Asadi S., Theoharides TC Kortikotropin salgılatıcı hormon ve hücre dışı mitokondri, luteolin tarafından inhibe edilen, IgE ile uyarılan insan mast hücresi vasküler endotelyal büyüme faktörü salınımını artırır. Nöroinflamasyon Dergisi . 2012; 9 :s. 6. doi: 10.1186/1742-2094-9-85. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              57. Çekici H., Şanlıer N. Otizm spektrum bozukluğunun yönetiminde güncel beslenme yaklaşımları: bir derleme. Beslenme sinirbilimi . 2019; 22 :145–155. doi: 10.1080/1028415x.2017.1358481. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              58. Matson JL, Fodstad JC Otizm spektrum bozukluğu olan çocuklarda besin seçiciliği ve diğer beslenme sorunlarının tedavisi. Otizm Spektrum Bozukluklarında Araştırma . 2009; 3 :455-461. [ Google Akademik ]
              59. Odar Stough C., Dreyer Gillette ML, Roberts MC, Jorgensen TD, Patton SR Otizm spektrum bozukluğu olan küçük çocuklar tarafından bilinmeyen gıdaların tüketimi ile ilişkili yemek zamanı davranışları. İştah . 2015; 95 :324-333. doi: 10.1016/j.appet.2015.07.019. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              60. Adams JB, Audhya T., McDonough-Means S., et al. Bir vitamin/mineral takviyesinin otizmli çocuklar ve yetişkinler üzerindeki etkisi. BMC Pediatri . 2011; 11 (1):s. 111. doi: 10.1186/1471-2431-11-111. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              61. Melmed R., Schneider C., Fabes R., Philips J., Reichelt K. Otizm ve ilgili bozuklukları olan çocuklarda metabolik belirteçler ve gastrointestinal semptomlar. Pediatrik Gastroenteroloji ve Beslenme Dergisi . 2000; 31 :s. S31. [ Google Akademik ]
              62. Ashwood P., Anthony A., Torrente F., Wakefield AJ Otizmli ve gastrointestinal semptomları olan çocuklarda spontan mukozal lenfosit sitokin profilleri: mukozal immün aktivasyon ve azaltılmış karşı düzenleyici interlökin-10. Klinik İmmünoloji Dergisi . 2004; 24 :664-673. [ PubMed ] [ Google Akademik ]
              63. Sanctuary MR, Kain JN, Angkustsiri K., Alman JB Otizm spektrum bozukluklarında diyetle ilgili düşünceler: bağırsak-beyin ekseninde protein sindirimi ve mikrobiyal çürümenin potansiyel rolü. Beslenmede Sınırlar . 2018; 5 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              64. Critchfield JW, Van Hemert S., Ash M., Mulder L., Ashwood P. Çocukluk otizm spektrum bozukluklarının yönetiminde probiyotiklerin potansiyel rolü. Gastroenteroloji Araştırma ve Uygulama . 2011; 2011 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              65. Golnik AE, İrlanda M. Otizmli çocuklar için tamamlayıcı alternatif tıp: bir doktor anketi. Otizm ve gelişimsel bozukluklar dergisi . 2009; 39 :996–1005. [ PubMed ] [ Google Akademik ]
              66. Kałużna-Czaplińska J., Błaszczyk S. Probiyotik tedavisi sonrası otistik çocuklarda arabinitol seviyesi. Beslenme . 2012; 28 :124–126. [ PubMed ] [ Google Akademik ]
              67. Rossignol DA, Frye RE Otizm spektrum bozukluğunda Alzheimer hastalığı için onaylanmış ilaçların kullanımı: sistematik bir derleme. Pediatride sınırlar . 2014; 2 : s. 8. doi: 10.3389/fped.2014.00087. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              68. Goel R., Hong JS, Findling RL, Ji NY Çocuklarda ve ergenlerde otizm spektrum bozukluğunun farmakoterapisi üzerine bir güncelleme. Pediatride sınırlar . 2018; 30 :78-95. doi: 10.1080/09540261.2018.1458706. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              69. Kessick R. Otizm ve Diyet: Bilmeniz Gerekenler . Londra, Birleşik Krallık: Jessica Kingsley Publishers; 2009. [ Google Akademik ]
              70. Deb S., Phukan BC, Dutta A., et al. Doğal ürünler ve otizm spektrum bozukluğu üzerindeki terapötik etkileri. Nörobiyolojideki gelişmeler . 2020; 24 :601-614. doi: 10.1007/978-3-030-30402-7_22. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              71. Nöropsikiyatrik bozukluklar için Lopresti AL Curcumin: in vitro, hayvan ve insan çalışmalarının gözden geçirilmesi. Psikofarmakoloji Dergisi . 2017; 31 :287–302. doi: 10.1177/0269881116686883. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              72. Vanduchova A., Anzenbacher P., Anzenbacherova E. Brokoliden izotiyosiyanat, sülforafan ve özellikleri. Tıbbi gıda dergisi . 2019; 22 :121–126. doi: 10.1089/jmf.2018.0024. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              73. Bhandari R., Kuhad A. Kurkuminin otizm spektrum bozukluklarının deneysel paradigmasında nöropsikofarmakoterapötik etkinliği. Yaşam Bilimleri . 2015; 141 :156–169. doi: 10.1016/j.lfs.2015.09.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              74. Al-Askar M., Bhat RS, Selim M., Al-Ayadhi L., El-Ansary A. VPA kaynaklı kemirgen otizm modellerindeki hasarı değiştirmek için kurkumin takviyeleri kullanarak doğum sonrası tedavi. BMC tamamlayıcı ve alternatif tıp . 2017; 17 :s. 11. doi: 10.1186/s12906-017-1763-7. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              75. Zuiki M., Chiyonobu T., Yoshida M., et al. Luteolin, insan iPSC'den türetilen nöral agregatlarda interlökin-6 aracılı astrogliozu hafifletir: maternal immün aktivasyonun neden olduğu anormallikler için aday bir koruyucu madde. Nörobilim Mektupları . 2017; 653 :296–301. [ PubMed ] [ Google Akademik ]
              76. Tsilioni I., Taliou A., Francis K., Theoharides TC Luteolin içeren bir diyet formülasyonu ile düzelen otizm spektrum bozukluğu olan çocuklar, düşük serum TNF ve IL-6 seviyeleri gösterirler. Çeviri psikiyatrisi . 2015; 5 :s. 5. doi: 10.1038/tp.2015.142. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              77. Taliou A., Zintzaras E., Lykouras L., Francis K. Anti-inflamatuar flavonoid luteolin içeren bir formülasyonun açık etiketli pilot çalışması ve otizm spektrum bozukluğu olan çocuklarda davranış üzerindeki etkileri. Klinik terapötikler . 2013; 35 :592-602. doi: 10.1016/j.clinthera.2013.04.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              78. Theoharides TC, Asadi S., Panagiotidou S. Otizm spektrum bozukluğu olan çocuklarda bir luteolin formülasyonu (NeuroProtek®) vaka serisi. Uluslararası İmmünopatoloji ve Farmakoloji Dergisi . 2012; 25 :317-323. [ PubMed ] [ Google Akademik ]
              79. Rangarajan P., Karthikeyan A., Dheen ST Mikroglia aracılı nöroinflamasyonu hafifletmede diyet fenollerinin rolü. Nöromoleküler tıp . 2016; 18 :453-464. doi: 10.1007/s12017-016-8430-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              80. Bambini-Junior V., Zanatta G., Della Flora Nunes G., et al. Resveratrol, valproik asidin neden olduğu otizm hayvan modelinde sosyal eksiklikleri önler. Nörobilim Mektupları . 2014; 583 :176-181. doi: 10.1016/j.neulet.2014.09.039. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              81. Bhandari R., Kuhad A. Resveratrol, otizm spektrum bozukluklarının deneysel paradigmasında nöroinflamasyonu baskılar. Nörokimya Uluslararası . 2017; 103 :8–23. doi: 10.1016/j.neuint.2016.12.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              82. Kim P., Park JH, Kwon KJ, et al. Kore kırmızı ginseng özlerinin nöral tüp kusurları üzerindeki etkileri ve doğum öncesi valproik aside maruz kalmanın neden olduğu sosyal etkileşimin bozulması. Gıda ve kimyasal toksikoloji . 2013; 51 :288–296. doi: 10.1016/j.fct.2012.10.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              83. Gonzales ELT, Jang JH, Mabunga DFN, et al. Kore Kırmızı Ginseng takviyesi, otizmli hayvan modellerinde davranış sapmalarını iyileştirir. Gıda ve Beslenme Araştırmaları . 2016; 60 (1):s. 29245. doi: 10.3402/fnr.v60.29245. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              84. Niederhofer H. Otistik bozukluğu olan hastaları tedavi eden Ginkgo biloba gözleminin ilk ön sonuçları. Fitoterapi Araştırması . 1645-1646; 2009 : s. 23. doi: 10.1002/ptr.2778. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              85. Hasanzadeh E., Mohammadi M.-R., Ghanizadeh A., et al. Otistik bozukluğu olan hastalarda risperidona eklenen Ginkgo biloba'nın çift kör, plasebo kontrollü bir denemesi. Çocuk Psikiyatrisi ve İnsan Gelişimi . 2012; 43 :674–682. doi: 10.1007/s10578-012-0292-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              86. Singh K., Connors SL, Macklin EA, et al. Otizm spektrum bozukluğunun sülforafan tedavisi (ASD) Ulusal Bilimler Akademisi Bildirileri . 2014; 111 :15550–15555. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              87. James SJ, Cutler P., Melnyk S., et al. Otizmli çocuklarda artmış oksidatif stres ve bozulmuş metilasyon kapasitesinin metabolik biyobelirteçleri. Amerikan Klinik Beslenme Dergisi . 1611-1617; 2004 : s. 80. doi: 10.1093/ajcn/80.6.1611. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              88. James SJ, Melnyk S., Fuchs G., et al. Otizmli çocuklarda metilkobalamin ve folinik asit tedavisinin glutatyon redoks durumu üzerine etkinliği. Amerikan Klinik Beslenme Dergisi . 2008; 89 :425–430. doi: 10.3945/ajcn.2008.26615. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              89. Gvozdjáková A., Kucharská J., Ostatníková D., Babinská K., Nakládal D., Crane FL Ubiquinol, otizmli çocuklarda semptomları iyileştirir. Oksidatif Tıp ve Hücresel Uzun Ömür . 2014; 2014 yılı : 10.1155/2014/798957. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              90. Delhey LM, Tippett M., Rose S., et al. Otizmle ilişkili metabolik bozuklukların tedavisinin karşılaştırılması: üç klinik çalışmanın yeniden analizi. Sinirbilimde Sınırlar . 2018; 12 : s. 19. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              91. Klaiman C., Huffman L., Masaki L., Elliott GR Otizm spektrum bozuklukları için bir tedavi olarak Tetrahidrobiopterin: çift kör, plasebo kontrollü bir çalışma. Çocuk ve ergen psikofarmakolojisi dergisi . 2013; 23 :320–328. [ PubMed ] [ Google Akademik ]
              92. Toda Y., Mori K., Hashimoto T., et al. Otizm için sekretin uygulaması, merkezi sinir sistemindeki dopamin metabolizmasını değiştirir. Beyin ve Gelişim . 2006; 28 :99–103. [ PubMed ] [ Google Akademik ]
              93. Frye RE, Huffman LC, Elliott GR Otizm için yeni bir terapötik müdahale olarak Tetrahidrobiopterin. Nöroterapötikler . 2010; 7 :241–249. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              94. Frye RE Nörogelişimsel bozukluklarda merkezi tetrahidrobiopterin konsantrasyonu. Sinirbilimde Sınırlar . 2010; 4 :s. 52. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              95. Frye R., DeLatorre R., Taylor H., et al. Otizm spektrum bozukluğunda sapropterin tedavisinin metabolik etkileri: bir ön çalışma. Çeviri psikiyatrisi . 2013; 3 :e237–e237. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              96. Frye RE, Rossignol DA Otizm spektrum bozukluğu ile ilişkili biyomedikal anormallikler için tedaviler. Sınır Pediatri . 2014; 2 : s. 8. doi: 10.3389/fped.2014.00066. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              97. Barnette DJ, Hanks C., Li WY, Porter K. Otizm spektrum bozukluğu olan ergen ve yetişkin popülasyonda hasta düzeyinde ilaç tedavisi rejimi karmaşıklığı. Farmakoterapi . 2019; 39 :636-644. doi: 10.1002/phar.2202. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              98. DeVane CL, Charles JM, Abramson RK, et al. Otizm spektrum bozukluğunun farmakoterapisi: randomize BAART Klinik Çalışmasının sonuçları. Farmakoterapi . 2019; 39 (6):626-635. doi: 10.1002/phar.2271. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              99. Diler RS, Fırat S., Avcı A. Otizmli çocuklarda açık etiketli bir risperidon denemesi. Güncel Terapötik Araştırma . 2002; 63 :91–102. doi: 10.1016/S0011-393X(02)80009-1. [ CrossRef ] [ Google Akademik ]
              100. McCracken JT, McGough J., Shah B., et al. Otizmli ve ciddi davranış sorunları olan çocuklarda risperidon. New England Tıp Dergisi . 2002; 347 (5):314–321. doi: 10.1056/NEJMoa013171. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              101. Horrigan JP, Barnhill LJ Risperidon ve patlayıcı agresif otizm. otizm ve gelişimsel bozukluklar bizim . 1997; 27 :313-323. doi: 10.1023/a:1025854532079. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              102. Jesner OS, Aref-Adib M., Coren E. Otizm spektrum bozukluğu için Risperidon. Sistematik İncelemelerin Cochrane Veritabanı . 2007 doi: 10.1002/14651858.CD005040.pub2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              103. Otizmli çocuklarda Nagaraj R., Singhi P., Malhi P. Risperidon: randomize, plasebo kontrollü, çift kör çalışma. Çocuk Nöroloji Dergisi . 2006; 21 :450–455. doi: 10.1177/08830738060210060801. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              104. Ching H., Pringsheim T. Otizm spektrum bozuklukları için Aripiprazol (ASD) Cochrane Sistematik İncelemeler Veritabanı . 2012 yılı: 10.1002/14651858.CD009043.pub2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              105. Owen R., Sikich L., Marcus RN, et al. Otistik bozukluğu olan çocuk ve ergenlerde sinirlilik tedavisinde Aripiprazol. Pediatri . 2009; 124 :1533–1540. doi: 10.1542/peds.2008-3782. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              106. Marcus RN, Owen R., Kamen L., et al. Otistik bozuklukla ilişkili irritabilitesi olan çocuk ve ergenlerde aripiprazolün plasebo kontrollü, sabit dozlu bir çalışması. Amerikan Çocuk ve Ergen Psikiyatrisi Akademisi Dergisi . 2009; 48 :1110–1119. doi: 10.1097/CHI.0b013e3181b76658. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              107. Marcus RN, Owen R., Manos G., et al. Otistik bozukluğu olan pediyatrik hastalarda (6-17 yaş arası) irritabilite tedavisinde aripiprazol: 52 haftalık, açık etiketli bir çalışmanın sonuçları. Çocuk ve Ergen Psikofarmakolojisi Dergisi . 2011; 21 :229–236. doi: 10.1089/cap.2009.0121. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              108. Lamy M., Erickson CA Otizm spektrum bozukluğu olan çocuk ve ergenlerde davranış bozukluklarının farmakolojik yönetimi. Çocuk ve Ergen Sağlığı Bakımında Güncel Sorunlar . 2018; 48 :250–264. doi: 10.1016/j.cppeds.2018.08.015. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              109. Eissa N., Al-Houqani M., Sadeq A., Ojha SK, Sasse A., Sadek B. Otizm spektrum bozukluğunun etiyolojisi ve farmakolojik tedavisi hakkında güncel aydınlanma. Sınır Sinirbilimi . 2018; 12 : s. 26. doi: 10.3389/fnins.2018.00304. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              110. Buckley AW, Sassower K., Rodriguez AJ, et al. Otizm spektrum bozukluğu olan küçük çocuklarda hızlı göz hareketi uykusunun arttırılması için donepezilin açık etiketli bir denemesi. Çocuk ve Ergen Psikofarmakolojisi Dergisi . 2011; 21 :353–357. doi: 10.1089/cap.2010.0121. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              111. Srivastava RK, Agarwal M., Pundhir A. Donepezil'in otizmdeki rolü: psikofarmakoterapide elverişliliği. Psikiyatride Vaka Raporları . 2011; 2011 yılı : 10.1155/2011/563204. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              112. Nicolson R., Craven-Thuss B., Smith J. Otistik bozuklukta prospektif, açık etiketli bir galantamin denemesi. Çocuk ve Ergen Psikofarmakolojisi Dergisi . 2006; 16 :621–629. doi: 10.1089/cap.2006.6.621. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              113. Chez MG, Burton Q., Dowling T., Chang M., Khanna P., Kramer C. Otistik spektrum bozuklukları teşhisi konan çocuklarda yardımcı tedavi olarak memantin: ilk klinik tepki ve idame toleransının bir gözlemi. Çocuk Nöroloji Dergisi . 2007; 22 :574–579. [ PubMed ] [ Google Akademik ]
              114. Otizmli ve/veya zihinsel engelli çocuklarda Handen BL, Sahl R., Hardan AY Guanfacine. Gelişimsel ve Davranışsal Pediatri Dergisi . 2008; 29 :303–308. [ PubMed ] [ Google Akademik ]
              115. Wang L., Cai YL, Fan XT Metformin doğum sonrası erken yaşam sırasında uygulanması BTBR T+Itpr3tf/J fare otizm modelinde otistik benzeri davranışları kurtarır. Davranışsal sinirbilimde sınırlar . 2018; 12 : s. 10. doi: 10.3389/fnbeh.2018.00290. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              116. Gantois I., Popic J., Khoutorsky A., Sonenberg N. Klotman ME, editör. Frajil X sendromu ve diğer nörolojik bozuklukların tedavisi için metformin. Tıbbın Yıllık Gözden Geçirilmesinde . 2019. s. 167-181. [ PubMed ]
              117. Handen BL, Anagnostou E., Aman MG, et al. Otizm spektrum bozukluğu olan genç insanlarda antipsikotik ilaçların neden olduğu aşırı kilo tedavisi için randomize, plasebo kontrollü bir metformin denemesi: açık etiketli uzatma. Amerikan Çocuk ve Ergen Psikiyatrisi Akademisi Dergisi . 2017; 56 (10):849-856.e6. doi: 10.1016/j.jaac.2017.07.790. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              118. Wink LK, Adams R., Pedapati EV, et al. Kısa rapor: otizm spektrum bozukluğu olan gençlerde antipsikotik kaynaklı kilo alımı için metformin. Otizm ve gelişimsel bozukluklar dergisi . 2017; 47 :2290–2294. doi: 10.1007/s10803-017-3132-2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              119. Naviaux JC, Schuchbauer MA, Li K., et al. Tek doz antipurinerjik tedavi ile yetişkin farelerde otizm benzeri davranışların ve metabolizmanın tersine çevrilmesi. Çeviri psikiyatrisi . 2014; 4 :s. 11. doi: 10.1038/tp.2014.33. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              120. Naviaux RK, Curtis B., Li K., et al. Otizm spektrum bozukluğunda düşük doz suramin: küçük, faz I/II, randomize bir klinik çalışma. Klinik ve Translasyonel Nöroloji Annals . 2017; 4 (7):491–505. doi: 10.1002/acn3.424. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              121. Ong WY, Farooqui T., Kokotos G., Farooqui AA Sentetik ve doğal fosfolipaz inhibitörleri A(2): nörolojik bozuklukların anlaşılması ve tedavisi için önemleri. ACS kimyasal sinirbilim . 2015; 6 :814-831. doi: 10.1021/acschemneuro.5b00073. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              122. Kim SJ, Shonka S., French WP, Strickland J., Miller L., Stein MA Dikkat eksikliği/hiperaktivite bozukluğu (DEHB) ve otizm spektrum bozukluğu (ASD) olan çocuklarda uzun etkili sıvı metilfenidatın doz-tepki etkileri : pilot çalışma. Otizm ve gelişimsel bozukluklar dergisi . 2017; 47 :2307–2313. doi: 10.1007/s10803-017-3125-1. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              123. Scahill L., Bearss K., Sarhangian R., et al. Otizm spektrum bozukluğu olan çocuklarda metilfenidatı plaseboya karşı test etmek için hasta merkezli bir sonuç ölçüsü kullanmak. Çocuk ve Ergen Psikofarmakolojisi Dergisi . 2017; 27 (2):125-131. doi: 10.1089/cap.2016.0107. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              124. AlOlaby RR, Sweha SR, Silva M., et al. Frajil X sendromlu küçük çocuklarda sertralin tedavisi yanıtını öngören moleküler biyobelirteçler. Beyin Gelişimi . 2017; 39 :483-492. doi: 10.1016/j.braindev.2017.01.012. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              125. Greiss Hess L., Fitzpatrick SE, Nguyen DV, et al. Frajil X sendromlu küçük çocuklarda randomize, çift kör, plasebo kontrollü düşük doz sertralin denemesi. Gelişimsel ve davranışsal pediatri dergisi: JDBP . 2016; 37 (8):619-628. doi: 10.1097/dbp.0000000000000334. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              126. Eslamzadeh M., Hebrani P., Behdani F., et al. Otizm spektrum bozukluklarında atomoksetinin etkinliğinin değerlendirilmesi: randomize, çift kör, plasebo kontrollü bir çalışma. İran Psikiyatri ve Davranış Bilimleri Dergisi . 2018; 12 : s. 7. doi: 10.5812/ijpbs.10596. [ CrossRef ] [ Google Akademik ]
              127. Harfterkamp M., Buitelaar JK, Minderaa RB, van de Loo-Neus G., van der Gaag RJ, Hoekstra PJ Atomoxetine in otizm spektrum bozukluğu: sosyal işlevsellik üzerinde hiçbir etkisi yoktur; basmakalıp davranışlar, uygunsuz konuşma ve değişim korkusu üzerinde bazı yararlı etkiler. Çocuk ve Ergen Psikofarmakolojisi Dergisi . 2014; 24 :481–485. doi: 10.1089/cap.2014.0026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              128. Handen BL, Aman MG, Arnold LE, et al. Otizm spektrum bozukluğu ve dikkat eksikliği/hiperaktivite bozukluğu olan çocuklarda atomoksetin, ebeveyn eğitimi ve bunların kombinasyonu. Amerikan Çocuk ve Ergen Psikiyatrisi Akademisi Dergisi . 2015; 54 (11):905-915. doi: 10.1016/j.jaac.2015.08.013. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              129. Blum NJ, Shults J., Harstad E., et al. Okul öncesi dikkat eksikliği hiperaktivite bozukluğunu tedavi etmek için uyarıcıların ve alfa-2 agonistlerinin ortak kullanımı: bir DBPNet çalışması. Gelişimsel ve Davranışsal Pediatri Dergisi . 2018; 39 :531-537. doi: 10.1097/dbp.0000000000000585. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              130. Gannon S., Osser DN Harvard South Shore Programındaki psikofarmakoloji algoritması projesi: yetişkinlerde otizm spektrum bozukluğunun temel semptomları için bir algoritma. Psikiyatri araştırması . 2020; 287 : s. 112900. [ PubMed ] [ Google Akademik ]
              131. Hegarty JP, Zamzow RM, Ferguson BJ, et al. Beta-adrenerjik antagonizma, otizmli ve otizmsiz bireylerin ön çalışmasında ilişkisel işleme sırasında işlevsel bağlantıyı değiştirir. otizm . 2020; 24 :795-801. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              132. London EB, Yoo JH, Fethke ED, Zimmerman-Bier B. Otizm spektrum bozukluğu olan bireylerde zorlu davranışlar için bir tedavi olarak yüksek doz propranololün güvenliği ve etkinliği. Klinik psikofarmakoloji dergisi . 2020; 40 :122–129. [ PubMed ] [ Google Akademik ]
              133. Sagar-Ouriaghli I., Lievesley K., Santosh PJ Propranolol, otizm spektrum bozukluğu olan çocuk ve ergenlerde duygusal, davranışsal, otonomik düzensizliğin tedavisi için. Psikofarmakoloji Dergisi . 2018; 32 :641–653. [ PubMed ] [ Google Akademik ]
              134. Taylor JL, Corbett BA Otizm spektrum bozukluğu olan bireylerde kortizolün ritmi ve tepkisi üzerine bir inceleme. Psikonöroendokrinoloji . 2014; 49 :207–228. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              135. Adhya D., Annuario E., Lancaster MA, Price J., Baron-Cohen S., Srivastava DP Steroidlerin tipik ve atipik beyin gelişimindeki rolünü anlamak: “bir tabakta beyin” yaklaşımı kullanmanın avantajları. Nöroendokrinoloji Dergisi . 2018; 30, makale e12547 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              136. Bener A., ​​Khattab AO, Al-Dabbagh MM Otizm bozukluğu için D Vitamini eksikliği kanıtının yüksek prevalansı mı?: yüksek oranda endogamik bir popülasyonda. Pediatrik Sinirbilimleri Dergisi . 2014; 9 :s. 227. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              137. Marí-Bauset S., Llopis-González A., Zazpe I., Marí-Sanchis A., Morales Suárez-Varela M. Akdeniz Bölgesinde (Valencia) otizm spektrum bozukluğu olan çocuklar ile tipik olarak gelişen çocuklar arasındaki beslenme durumunun karşılaştırılması , İspanya) Otizm . 2017; 21 :310-322. doi: 10.1177/1362361316636976. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              138. Altun H., Kurutaş EB, Şahin N., Güngör O., Fındıklı E. Otizm spektrum bozukluğu olan çocuklarda D vitamini, D vitamini reseptörü, homosistein ve kompleks B vitamini düzeyleri. Klinik Psikofarmakoloji ve Sinirbilim . 2018; 16 :383-390. doi: 10.9758/cpn.2018.16.4.383. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              139. Barnhill K., Gutierrez A., Ghossainy M., et al. Otizm spektrum bozukluğu olan çocukların diyet durumu ve besin alımı: bir vaka kontrol çalışması. Otizm Spektrum Bozukluklarında Araştırma . 2018; 50 :51-59. doi: 10.1016/j.rasd.2018.03.002. [ CrossRef ] [ Google Akademik ]
              140. Bjørklund G., Waly MI, Al-Farsi Y., et al. Otizm spektrum bozukluğunda vitaminlerin rolü: Ne biliyoruz? Moleküler Sinirbilim Dergisi . 2019:1–15. [ PubMed ] [ Google Akademik ]
              141. Gogou M., Kolios G. Diyet takviyelerinin otizm spektrum bozukluğunun klinik yönleri üzerindeki etkisi: literatürün sistematik bir incelemesi. Beyin ve Gelişim . 2017; 39 :656-664. doi: 10.1016/j.braindev.2017.03.029. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              142. Jia F., Wang B., Shan L., Xu Z., Staal WG, Du L. D vitamini takviyesinden sonra otizmin çekirdek semptomları düzeldi. Pediatri . 2015; 135 :e196–e198. doi: 10.1542/peds.2014-2121. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              143. Saad K., Abdel-Rahman AA, Elserogy YM, et al. Otizm spektrum bozukluğu olan çocuklarda D vitamini takviyesinin randomize kontrollü çalışması. Çocuk Psikolojisi ve Psikiyatrisi Dergisi . 2018; 59 (1):20–29. doi: 10.1111/jcpp.12652. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              144. Swed-Tobia R., Haj A., Militianu D., et al. İskorbüte yol açan otizm spektrum bozukluğunda son derece seçici yeme: bir dizi üç hasta. Pediatrik Nöroloji . 2019; 94 :61-63. doi: 10.1016/j.pediatrneurol.2018.12.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              145. Guo M., Zhu J., Yang T., et al. A vitamini, otizm spektrum bozukluklarının semptomlarını iyileştirir ve 5-hidroksitriptamini (5-HT) azaltır: bir pilot çalışma. Beyin Araştırmaları Bülteni . 2018; 137 :35-40. doi: 10.1016/j.brainresbull.2017.11.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              146. Stewart PA, Hyman SL, Schmidt BL, et al. Otizm spektrum bozukluğu olan çocuklarda diyet takviyesi: yaygın, yetersiz ve aşırı. Beslenme ve Diyetetik Akademisi Dergisi . 2015; 115 :1237–1248. doi: 10.1016/j.jand.2015.03.026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              147. Theoharides TC, Asadi S. Otizm spektrum bozuklukları için psikotrop ilaçlar ve diğer tedaviler arasında istenmeyen etkileşimler. Klinik Psikofarmakoloji Dergisi . 2012; 32 :437–440. doi: 10.1097/JCP.0b013e31825e00e4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              148. Raichle ME, Gusnard DA Beynin enerji bütçesinin değerlendirilmesi. Ulusal Bilimler Akademisi Bildirileri . 2002; 99 :10237–10239. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              149. Harris JJ, Jolivet R., Attwell D. Sinaptik enerji kullanımı ve arzı. Nöron . 2012; 75 :762–777. [ PubMed ] [ Google Akademik ]
              150. Kimura T., Murakami F. Dendritik mitokondrinin neokorteksteki piramidal nöronlardaki dendritik dallanmayı negatif olarak düzenlediğine dair kanıt. Nörobilim Dergisi . 2014; 34 :6938-6951. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              151. Xavier JM, Rodrigues CM, Solá S. Mitokondri: nöral gelişimin başlıca düzenleyicileri. Nörobilimci . 2016; 22 :346–358. [ PubMed ] [ Google Akademik ]
              152. Fiorani M., Guidarelli A., Blasa M., et al. Mitokondri büyük miktarlarda kuersetin biriktirir: mitokondri hasarının önlenmesi ve flavonoidin ekstramitokondriyal fraksiyonunun oksidasyonu üzerine salınması. Beslenme Biyokimyası Dergisi . 2010; 21 :397-404. [ PubMed ] [ Google Akademik ]
              153. Sandoval-Acuna C., Ferreira J., Speisky H. Polifenoller ve mitokondri: giderek artan ROS süpürücü bağımsız eylemleri hakkında bir güncelleme. Biyokimya ve Biyofizik Arşivleri . 2014 yılı: 10.1016/j.abb.2014.05.017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              154. Chung S., Yao H., Caito S., Hwang JW, Arunachalam G., Rahman I. Hücresel fonksiyonlarda SIRT1'in düzenlenmesi: Polifenollerin rolü. Biyokimya ve Biyofizik Arşivleri . 2010; 501 (1):79–90. doi: 10.1016/j.abb.2010.5.003. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              155. Ungvari Z., Labinskyy N., Mukhopadhyay P., et al. Resveratrol, endotel hücrelerinde mitokondriyal biyogenezi indükler. Amerikan Fizyoloji-Kalp ve Dolaşım Fizyolojisi Dergisi . 2009; 1632 :H13–H20. [ Google Akademik ]
              156. Higashida K., Kim SH, Jung SR, Asaka M., Holloszy JO, Han DH Resveratrol ve SIRT1'in PGC-1 a aktivitesi ve mitokondriyal biyogenez üzerindeki etkileri : bir yeniden değerlendirme. PLoS Biyoloji . 2013; 2013, makale e1001603 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              157. Negrette-Guzman M., Huerta-Yepez S., Tapia E., Pedraza-Chaverri J. Dolaylı antioksidan sülforafan tarafından mitokondriyal fonksiyonların modülasyonu: Görünüşte çelişkili bir ikili rol ve bütünleştirici bir hipotez. Serbest Radikal Biyoloji ve Tıp . 2013; 65 :1078–1089. doi: 10.1016/j.freeradbiomed.2013.08.182. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              158. Brose RD, Shin G., McGuinness MC, et al. Küçük moleküllü terapötikler için bir mekanizma olarak stres proteomunun aktivasyonu. İnsan Moleküler Genetiği . 2012; 21 (19):4237-4252. doi: 10.1093/hmg/dds247. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              159. Carrasco-Pozo C., Mizgier M., Speisky H., Gotteland M. Quercetin, resveratrol, rutin ve epigallocatechin gallatın Caco-2 hücrelerinde indometasinin neden olduğu mitokondriyal disfonksiyona karşı farklı koruyucu etkileri. Kimyasal-Biyolojik Etkileşimler . 2012; 195 :199–205. [ PubMed ] [ Google Akademik ]
              160. Cong L., Cao C., Cheng Y., Qin XY Yeşil çay polifenolleri, birincil kültürlenmiş kortikal nöronlarda antioksidatif ve antiapoptotik yol aracılığıyla glutamat eksitotoksisitesini hafifletti. Oksidatif Tıp ve Hücresel Uzun Ömür . 2016; 2016 : 8. doi: 10.1155/2016/2050435. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              161. Lee HH, Yang LL, Wang CC, Hu SY, Chang SF, Lee YH Doğal polifenollerin glutamat ve glukoz yoksunluğu kaynaklı nöronal ölüme karşı birincil kültürlenmiş merkezi nöronlarda nöronal hayatta kalma üzerindeki farklı etkileri. Beyin Araştırması . 2003; 986 :103–113. [ PubMed ] [ Google Akademik ]
              162. Kim JJ, Kang YJ, Shin SA, et al. Phlorofucofuroeckol, PC12 hücrelerinde oksidatif stres aracılı mitokondriyal disfonksiyonun modülasyonu yoluyla glutamat kaynaklı nörotoksisiteyi iyileştirir. PLoS Bir . 2016; 11 (9, makale e0163433) doi: 10.1371/journal.pone.0163433. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              163. McKinnell ZE, Maze T., Ramos A., Challans B., Plakke B. Valproik asitle tedavi edilen dişi Long-Evans sıçanları, dikkati set değiştirmede bozulur. Davranışsal beyin araştırması . 2021; 397 :s. 112966. doi: 10.1016/j.bbr.2020.112966. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              164. Rebolledo-Solleiro D. BPA'nın davranış, nörogelişim ve nörodejenerasyon üzerindeki etkisi. Biyolojide Sınırlar . 2021; 26 :363–400. [ PubMed ] [ Google Akademik ]
              165. Cabrera C., Artacho R., Gimenez R. Yeşil çayın faydalı etkileri. Amerikan Beslenme Koleji Dergisi . 2006; 25 :79-99. [ PubMed ] [ Google Akademik ]
              166. Banji D., Banji OJ, Abbagoni S. Hayvanlarda valproat kaynaklı otizmde yeşil çay ekstresi ile davranış bozukluklarının ve oksidatif belirteçlerin iyileştirilmesi. Beyin Araştırması . 2011; 1410 :141–151. [ PubMed ] [ Google Akademik ]
              167. Choi BM, Kim SM, Park TK Piperine, işitsel hücrelerde heme oksijenaz-1 indüksiyonu yoluyla sisplatin kaynaklı apoptozu korur. Beslenme Biyokimyası Dergisi . 2007; 18 :615-622. [ PubMed ] [ Google Akademik ]
              168. Fu M., Sun ZH, Zuo HC Piperinin öncelikle kültürlenmiş hipokampal nöronlar üzerindeki nöroprotektif etkisi. Biyolojik ve Farmasötik Bülten . 2010; 33 :598-603. [ PubMed ] [ Google Akademik ]
              169. Wattanathorn J., Chonpathompikunlert P., Muchimapura S. Piperine, ruh hali ve bilişsel bozukluklar için potansiyel fonksiyonel gıda. Gıda ve Kimyasal Toksikoloji . 2008; 46 :3106-3110. [ PubMed ] [ Google Akademik ]
              170. Pragnya B., Kameshwari JS, Veeresh B. BALB/C farelerinde sodyum valproat kaynaklı otizmde piperin davranış anormallikleri ve oksidatif belirteçler üzerindeki iyileştirici etkisi. Davranışsal Beyin Araştırması . 2014; 15 :86-94. [ PubMed ] [ Google Akademik ]
              171. Herbert MR Otizm spektrum bozukluklarına çevrenin ve çevreye duyarlı fizyolojinin katkıları. Nörolojide Güncel Görüş . 2010; 23 :103–110. [ PubMed ] [ Google Akademik ]
              172. Rossignol DA, Frye RE Otizmli bireylerin beyninde oksidatif stres, mitokondriyal disfonksiyon ve inflamasyonu ilişkilendiren kanıtlar. Fizyolojide Sınırlar . 2014; 2014 : s. 150. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              173. Bakheet S., Zeed M., Ahmad-Ansari M. Resveratrol, BTBR T + tf/J otizm fare modelinde Th1, Th2, Th17 ve T düzenleyici hücre ile ilgili transkripsiyon faktörü sinyallemesinin düzensizliğini iyileştirir. Moleküler Nörobiyoloji . 2017; 54 :5201–5212. [ PubMed ] [ Google Akademik ]
              174. Mythri RB, Bharath MM Kurkumin: Parkinson hastalığında potansiyel bir nöroprotektif ajan. Güncel Farmasötik Tasarım . 2012; 18 :91–99. [ PubMed ] [ Google Akademik ]
              175. Aggarwal BB, Harikumar KB Antiinflamatuar ajan olan kurkuminin nörodejeneratif, kardiyovasküler, pulmoner, metabolik, otoimmün ve neoplastik hastalıklara karşı potansiyel terapötik etkileri. Uluslararası Biyokimya ve Hücre Biyolojisi Dergisi . 2009; 41 :40-59. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              176. Blaylock RL, Strunecka A. Otizm spektrum bozukluklarının merkezi bir mekanizması olarak immün-glutamaterjik işlev bozukluğu. Güncel Tıbbi Kimya . 2009; 16 :157–170. [ PubMed ] [ Google Akademik ]
              177. Malishev R., Shaham-Niv S., Nandi S. Bir Hint geleneksel tıp maddesi olan Bacoside-A, b-amiloid sitotoksisitesini, fibrilasyonu ve membran etkileşimlerini inhibe eder. ACS Kimyasal Sinirbilim . 2017; 8 :884-891. [ PubMed ] [ Google Akademik ]
              178. Russo A., Borrelli F. Bacopa monniera, tanınmış bir nootropik bitki: genel bir bakış. bitki ilacı . 2005; 12 :305–317. [ PubMed ] [ Google Akademik ]
              179. Gohil KJ, Patel JJ Bacopa monniera üzerine bir inceleme: mevcut araştırmalar ve geleceğe yönelik beklentiler. Uluslararası Yeşil Eczacılık Dergisi (IJGP) 2010; 4 :1–9. [ Google Akademik ]
              180. Kean JD, Kaufman J., Lomas J. Özel bir Bacopa monnieri özütünün (CDRI 08) erkek çocuk ve ergenlerde hiperaktivite ve dikkatsizlik üzerindeki etkilerini araştıran randomize kontrollü bir çalışma: BACHI çalışma protokolü. Besinler . 2015; 7 :9931–9945. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              181. Sandhya T., Sowjanya J., Veeresh B. Bacopa monniera (L.) Wettst, sıçanlarda sodyum valproat kaynaklı otizmde davranış değişikliklerini ve oksidatif belirteçleri iyileştirir. Nörokimyasal araştırma . 2012; 37 :1121-1131. [ PubMed ] [ Google Akademik ]
              182. Jin SH, Park JK, Nam KY Düşük oranlarda protopanaksadiol ve protopanaksatriol saponin içeren Kore kırmızı ginseng saponinleri, farelerde skopolamin kaynaklı öğrenme güçlüğünü ve uzamsal çalışma belleğini iyileştirir. Etnofarmakoloji Dergisi . 1999; 66 : s. 1239. [ PubMed ] [ Google Akademik ]
              183. Keum Y.-S., Park K.-K., Lee J.-M., et al. Isı ile işlenmiş ginsengin metanol ekstraktının antioksidan ve anti-tümör destekleyici aktiviteleri. Kanser Mektupları . 2000; 150 : s. 418. [ PubMed ] [ Google Akademik ]
              184. Kim CS, Park JB, Kim KJ Kore kırmızı ginsenginin serebral kan akışı ve süperoksit üretimi üzerindeki etkisi. Acta Pharmacologica Sinica . 2002; 23 :s. 11526. [ PubMed ] [ Google Akademik ]
              185. Maclennan KM, Darlington CL, Smith PF Ginkgo biloba ekstraktlarının ve ginkgolid'in CNS etkileri B. Nörobiyolojide ilerleme . 2002; 67 :235–257. [ PubMed ] [ Google Akademik ]
              186. Bertolino B., Crupi R., Impellizzeri D. Coultramicronize palmitoiletanolamid/luteolin'in bir fare otizm modelinde ve bir otizm vaka raporunda faydalı etkileri. CNS sinirbilimi ve terapötikleri . 2017; 23 :87-98. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              187. Cristiano C., Pirozzi C., Coretti L., et al. Palmitoiletanolamid BTBR T+tf/J farelerinde otistik benzeri davranışlara karşı koyar: merkezi ve çevresel mekanizmaların katkısı. Beyin, davranış ve bağışıklık . 2018; 74 :166–175. doi: 10.1016/j.bbi.2018.09.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              188. Hartman RE, Patel D. Otizm spektrum bozukluklarının yönetimine diyetsel yaklaşımlar. Nörobiyolojideki gelişmeler . 2020; 24 :547–571. doi: 10.1007/978-3-030-30402-7_19. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              189. Gogou M., Kolios G. Gebelik ve otizm spektrum bozukluğu sırasında besin takviyeleri: Gerçekten ne biliyoruz ve ne kadar ileri gittik? Amerikan Beslenme Koleji Dergisi . 2020; 39 :261-271. doi: 10.1080/07315724.2019.1635920. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              190. Infante M., Sears B., Rizzo AM, et al. Otizm spektrum bozukluğunun temel semptomları için güvenli ve etkili bir terapötik yaklaşım olarak Omega-3 PUFA'lar ve D vitamini birlikte takviyesi: vaka raporu ve literatür taraması. Beslenme sinirbilimi . 2020; 23 :779–790. doi: 10.1080/1028415x.2018.1557385. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              191. Sivamaruthi BS, Suganthy N., Kesika P., Chaiyasut C. Otizm spektrum bozukluğunda mikrobiyom, diyet takviyeleri ve probiyotiklerin rolü. Uluslararası çevre araştırmaları ve halk sağlığı dergisi . 2020; 17 doi: 10.3390/ijerph17082647. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              192. Ahearn WH, Castine T., Nault K., Green G. Otizmli veya yaygın gelişimsel bozukluğu olan çocuklarda gıda kabulünün değerlendirilmesi - başka türlü belirtilmemiş. Otizm ve gelişimsel bozukluklar dergisi . 2001; 31 :505–511. doi: 10.1023/a:1012221026124. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              193. Mostafavi M., Gaitanis J. Otizm spektrum bozukluğu ve tıbbi esrar: inceleme ve klinik deneyim. Pediatrik nörolojide seminerler . 2020; 35 :s. 100833. doi: 10.1016/j.spen.2020.100833. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              194. Theoharides T. Otizmin bir alt tipi beynin alerjisi midir? Klinik terapötikler . 2013; 35 :584–589. [ PubMed ] [ Google Akademik ]
              195. Antonucci N., Cirillo A., Siniscalco D. Palmitoiletanolamidin otizmde ifade edici dil, biliş ve davranışlar üzerindeki faydalı etkileri: iki vaka raporu. Psikiyatride olgu sunumları . 2015; 2015 :325061. doi: 10.1155/2015/325061. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]

              Yorum yap


              • #8
                Otizm spektrum bozuklukları ve eşlik eden gastrointestinal semptomları olan çocuklarda farklı immün yanıtlar ve mikrobiyota profilleri

                Destanie R. Rose , 1, 2 Houa Yang , 1, 2 Gloria Serena , 3, 4 Craig Sturgeon , 3, 4 Bing Ma , 5 Milo Careaga , 1, 2 Heather K. Hughes , 1, 2 Kathy Angkustsiri , 2, 6 , 7 Melissa Rose , 7, 8 Irva Hertz-Picciotto , 2, 7, 8 Judy Van de Water , 2, 7, 9 Robin L Hansen , 2,6, 7 Jacques Ravel , 5 Alessio Fasano , 3 ve Paul Ashwood 1, 2, 7
                Yazar bilgileri Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                Bu makalenin yayıncının son düzenlenmiş versiyonu Brain Behav Immun'da mevcuttur.
                PMC'de yayınlanan makaleye atıfta bulunan diğer makalelere bakın. İlişkili Veriler

                Ek Malzemeler
                Git: Soyut

                Hedefler


                Birçok çalışma, otizm spektrum bozukluğu (ASD) olan çocuklarda gastrointestinal (GI) semptomların varlığının arttığını bildirmiştir. ASD ve eşlik eden GI semptomları olan çocuklarda değişmiş mikrobiyom profilleri, proinflamatuar yanıtlar ve bozulmuş bağırsak geçirgenliği gözlemlenmiştir, ancak bu bulguları GI sorunları olmayan OSB çocukları veya benzer şekilde yaşlı tipik gelişen çocuklarla karşılaştıran çok az çalışma vardır. Bu çalışmanın amacı, GI semptomları olan OSB'li çocuklarda immün disfonksiyon ve mikrobiyota kompozisyonu açısından biyolojik imzaların olup olmadığını belirlemektir. yöntemler


                Çocuklar dört gruptan birine kaydedildi: düzensiz bağırsak alışkanlıklarının OSB ve GI semptomları (ASD GI ), OSB'si olan ancak mevcut veya önceki GI semptomları olmayan çocuklar (ASD NoGI ), tipik olarak GI semptomları olan ve tipik olarak gelişen çocuklar (TD GI ) Mevcut veya önceki GI semptomları olmayan çocuklar (TD NoGI ). Periferik kan mononükleer hücreleri (PBMC) kandan izole edildi, uyarıldı ve sitokin üretimi açısından değerlendirildi, bu sırada dışkı numuneleri mikrobiyal bileşim için analiz edildi. Sonuçlar


                Toll-Benzeri reseptör (TLR)-4 stimülasyonunun ardından, ASD GI grubu, ASD NoGI'ye kıyasla IL-5, IL-15 ve IL-17 dahil olmak üzere mukoza ile ilgili sitokinlerin artan seviyeleri üretti . Düzenleyici sitokin TGFβ1'in üretimi, hem ASD NoGI hem de TD NoGI gruplarına kıyasla ASD GI grubunda azalmıştır . Aile düzeyinde mikrobiyomun analizi, GI semptomları olan OSB ve TD çocukları arasındaki mikrobiyom bileşimindeki farklılıkları ortaya çıkardı; ayrıca, öngörücü bir metagenom fonksiyonel içerik analizi, GI semptomlarının varlığından bağımsız olarak, ASD ve TD denekleri arasında yolların farklı şekilde temsil edildiğini ortaya koydu. ASD GI ayrıca diğer gruplara kıyasla bağırsak geçirgenliğini düzenleyen bir molekül olan zonulin kodlayan genin aşırı temsil edildiğini gösterdi. Sonuçlar


                Genel olarak bulgularımız, GI semptomları yaşayan OSB'li çocukların bağışıklık tepkilerinde, muhtemelen metagenomik değişikliklerden etkilenen veya onları etkileyen bir dengesizliğe sahip olduğunu ve semptomlarına ve klinik sonuçlarına katkıda bulunabilecek bozulmuş bağırsak bariyeri işlevine eğilimi olabileceğini düşündürmektedir.

                Anahtar Kelimeler: OSB, Otizm, Sitokinler, Gastrointestinal, Bağışıklık, Mukozal Bağışıklık, Mikrobiyota, zonulin
                Git: 1. Giriş


                Otizm spektrum bozuklukları (OSB), sosyal bozukluklar ve tekrarlayan veya kalıplaşmış davranışların varlığı ile tanımlanan nörogelişimsel bozukluklardır. OSB şu anda ABD'deki her 68 çocuktan 1'ini etkiliyor ( Wingate 2014 ). OSB vakalarının çoğu için etiyoloji(ler) bilinmemektedir; ancak genel olarak hem genetik hem de çevresel faktörlerin OSB riskine katkıda bulunduğu kabul edilmektedir ( Abrahams ve Geschwind 2008 , Geschwind 2008 , Landrigan 2010 , Hallmayer ve ark. 2011 ). OSB öncelikle beyni etkileyen bir durum olarak kabul edilse de, gastrointestinal (GI) sistemdekiler de dahil olmak üzere diğer organlardaki komorbid özellikler tanımlanmıştır ( Gillberg ve Billstedt 2000)., Bauman 2010 , Ballard ve ark. 2016 , Hirata ve ark. 2016 , Mannion ve Lider 2016 ).

                Tarihsel olarak, orijinal vaka serilerinde Kanner, 11 otizmli çocuktan 6'sında kusma ve beslenme sorunlarını tanımladı; bu, küçük çiçek aşısı sonrası ishal olan yedinci bir vaka iken, bir diğeri “dışkısına takıntılıydı” ( Kanner 1943 ). Frekans% 70 20 her yerde rapor ile ASD çocuklarda Gİ semptomların oranları araştıran epidemiyolojik çalışmalar, geniş bir çeşitlilik sergilemektedir ( Horvath ve Perman 2002 , Molloy ve Manning-Courtney 2003 , Parracho vd. 2005 , Niehus ve Rab 2006 , Valicenti-McDermott ve diğerleri 2006 , Xue ve diğerleri 2008 , Buie ve diğerleri 2010 , Coury ve diğerleri 2012 ,Chaidez et al. 2014 ). Bildirilen oranlardaki farklılıklar büyük olasılıkla çalışma türüne (geriye dönük ve ileriye dönük), semptomların nasıl rapor edildiğine (ebeveyn raporuna karşı tıbbi kayıtlara), semptomların görülme süresine, çalışmaya katılanların yaşına, standardizasyon eksikliğine bağlıdır. GI semptomolojisinin tanımı ve tanımları ve belirli sevk önyargılarını ortaya çıkarabilecek uzman pediatrik gastroenteroloji kliniklerinde yapılan popülasyon temelli vaka kontrol çalışmaları ile çalışmalar arasındaki farklılıklarla ilgili olarak ( Mannion ve ark. 2013 , Rose ve Ashwood 2015).). Yakın zamanda tanımlanmış bir coğrafi bölgede yürütülen geniş popülasyona dayalı bir vaka kontrol çalışmasında, yaklaşık 1000 çocuktan elde edilen veriler, OSB'li kişilerin son 6 ayda gaz hali/şişkinlik, ishal dahil olmak üzere sık GI semptomlarına sahip olma olasılığının 6 ila 8 kat daha fazla olduğunu göstermiştir. , kabızlık ve gıdalara duyarlılık, yaş, cinsiyet, bölge uyumlu tipik olarak gelişmiş çocuklara kıyasla ( Chaidez ve ark. 2014 ). Ayrıca, 3 büyük çalışma popülasyonundan elde edilen verilere dayanarak, klinik olarak teşhis edilen inflamatuar bağırsak hastalığı (IBD) prevalansının OSB'de arttığı gösterilmiştir (23).

                Daha ileri raporlar, OSB ve GI semptomları olan çocukların uyku bozukluğu, ani sinirlilik, açıklanamayan ağlama, saldırgan davranış yaşama olasılıklarının daha yüksek olduğunu ve GI semptomları olmayan OSB'li çocuklara göre davranışsal değerlendirmelerde daha kötü puan aldıklarını göstermiştir ( Horvath ve Perman 2002 , Chaidez ve ark. 2014 ). Davranışsal ve nörolojik problemlerin benzer bulguları, GI disfonksiyonu ile karakterize edilen diğer hastalıklarda görülür ( Bushara 2005 , Genuis ve Bouchard 2010 ) ve GI disfonksiyonu ile davranış değişiklikleri arasındaki bağlantıyı destekler. Hans Asperger, çölyak hastalığı olan çocukların da sıklıkla psikolojik sorunlar sergilediğini bildirmiştir ( Asperger 1961).). Anksiyete, depresyon, epilepsi, şiddetli ilerleyici nöropati, yürüyüş ataksisi ve ekstremite ataksisi de çölyak hastalığı olan erişkin hastalarda görülür ( Hallert ve Derefeldt 1982 , Hadjivassiliou ve ark. 2002 , Bushara 2005 , Fasano ve Catassi 2005 , Genuis ve Bouchard 2010 ) . İrritabl bağırsak sendromu (IBS), ülseratif kolit ve Crohn hastalığı gibi hastalıkları/sendromları olan kişilerde psikiyatrik semptomlar da bildirilmiştir ( Ringel ve Drossman 2001 , Ringel ve Drossman 2002 ).

                OSB'li çocuklarda GI işlev bozukluğunun altta yatan patolojisini değerlendirmeye odaklanan çalışmalar, bağırsak protein kaybını düşündüren düşük a-1-antitripsin konsantrasyonları ( Walker-Smith ve Andrews 1972 ), bir laktuloz:mannitol testi ile ölçüldüğü üzere bağırsak geçirgenliğinde artış ( D) göstermiştir. 'Eufemia ve diğerleri 1996 , de Magistris ve diğerleri 2010 ) ve GI semptomları için klinik çalışmanın bir parçası olarak endoskopi veya kolonoskopiden sonra bulunan bağırsak yolunda yaygın bir enflamasyonun varlığı ( buie ve diğerleri 2010'da gözden geçirilmiştir) .)). Bu iltihabın kesin doğası tartışmalı ve çok tartışıldı. Bununla birlikte, tartışmalara rağmen, histolojik, immünohistokimyasal ve akış sitometrisi çalışmalarından elde edilen kanıtlar, ASD ve GI'li çocuklarda aktif lenfositlerin, monositlerin, doğal öldürücü (NK) hücrelerin ve eozinofillerin GI kanalının duvarlarına ince, pan-enterik bir infiltrasyonunu önermiştir. benzer GI semptomları olan tipik gelişen çocuklarla karşılaştırıldığında ( Furlano ve ark. 2001 , Torrente ve ark. 2002 , Ashwood ve ark. 2003 , Ashwood ve ark. 2004 , Torrente ve ark. 2004 ).

                Kontrollere kıyasla dışkıda daha yüksek Clostridium sayımları raporları ( Finegold ve diğerleri 2002 , Finegold ve diğerleri 2010 ), Clostridium grupları C. bolteae'deki farklılıklar dahil olmak üzere, OSB ve GI semptomları olan bireylerin bağırsak mikrobiyotasını değiştirdiğine dair göstergeler de vardır . ve C. küme I ve XI ( Song ve diğerleri 2004 ), daha yüksek bir C. histolyticum insidansı ( Parracho ve diğerleri. 2005 ), sınıflandırılmamış Veillonellaceae, Prevotella, Coprococcus ve sınıflandırılmamış Prevotellaceae türlerinde azalma ( Kang ve diğerleri. 2013 ), değişmiş Bacteroides/Firmicutes oranları ve artan desulfovibrio ( Finegold et al. 2010 , Tomova et al. 2015) ve kontrollere kıyasla artan Sutterella ve Ruminococcus torkları ( Wang ve ark. 2013 ). İlginç bir şekilde, bir çalışmada OSB ve GI semptomları olan çocuklarda disbiyoz ve mukoepitelyum tabakasında disakkaridazlar için düşük transkript seviyeleri rapor edilmiş ve konak enzimlerindeki azalmanın disbiyoza katkıda bulunabileceği varsayılmıştır ( Williams ve ark. 2011 ). Bir bütün olarak ele alındığında, bu veriler disbiyozun GI semptomları olan OSB'li çocukların bir özelliği olabileceğini düşündürmektedir, ancak mikrobiyota değişikliklerinin tam doğası ve özgüllüğü veya bu değişikliklerin GI semptomları olmayan OSB'li çocuklarda da bulunup bulunmadığı hala uzaktır. net'ten.

                Şu anda, OSB ve GI semptomları olan çocukların OSB içinde benzersiz bir fenotip olup olmadığı veya bunun nörogelişimle ilgisi olmayan bir komorbidite olup olmadığı iyi anlaşılmamıştır. Burada, OSB ve GI semptomları olan çocuklarda GI mikrobiyotasının ve periferik immün yanıtın değişip değişmediğini daha fazla anlamaya ve GI semptomları olmayan OSB'li çocuklara kıyasla immün disfonksiyon ve mikrobiyota bileşimi açısından biyolojik imzalar olup olmadığını belirlemeye çalıştık. Hem düzensiz bağırsak hareketleri olan hem de olmayan OSB'li çocukların iyi karakterize edilmiş bir kohortunda, tipik olarak gelişen çocuklara kıyasla, mikrobiyota, zonulin kodlayan gen, bağırsak geçirgenliğini ve periferik bağışıklık tepkisini düzenleyen bir moleküldeki farklılıkları değerlendirdik.

                Git: yöntemler

                2.1. konular


                Bu çalışma için katılımcılar, UC Davis MIND Enstitüsü aracılığıyla işe alındı ​​ve hepsi daha önce Genetik ve Çevreden Kaynaklanan Çocukluk Çağı Otizm Riski (CHARGE) çalışmasına kayıtlıydı ( Hertz-Picciotto ve diğerleri, 2006 ). Katılımcılar 4 gruptan seçilmiştir: 1) OSB ve düzensiz bağırsak hareketlerinin GI semptomları olan çocuklar (ASD GI ); 2) OSB olan ve GI semptomları olmayan çocuklar (ASD NoGI ); 3) düzensiz bağırsak hareketlerinin GI semptomları olan tipik olarak gelişen çocuklar (TD GI ) ve; 4) GI semptomları olmayan tipik gelişen çocuklar (TD NoGI ) (tablo 1). Bu çalışmaya yaşları 3 ile 12 arasında değişen toplam 103 katılımcı dahil edildi, 88 katılımcı hem dışkı hem de kan örneği verdi, 12 katılımcıya sadece kan analizi yapıldı ve 3 katılımcıya sadece dışkı örneği analiz edildi. Dışlamalardan sonra (aşağıya bakınız) 100 kan örneğinden sadece 87'si hücresel tahlilleri yürütmek için yeterli hücre sayısına sahipti. UC Davis MIND Enstitüsünde, orijinal CHARGE çalışmasına kayıt sırasında Otizm Tanısal Görüşme-Revize Edilmiş (ADI-R) ve Otizm Tanısal Gözlem Çizelgesi (ADOS) kullanılarak eğitimli personel tarafından otizm spektrum bozukluğu tanısı doğrulanmıştır. Tüm denekler 2013'ten önce ve DSM IV'e göre teşhis edildi. Tipik gelişen grupta OSB'nin davranışsal ve gelişimsel özelliklerini dışlamak, ekran olarak Sosyal İletişim Anketi (SCQ) kullanılmıştır. TD gruplarındaki katılımcıların SCQ'da tipik aralık içinde, yani 15'in altında ve Mullen Erken Öğrenme Ölçekleri (MSEL) ve Vineland Uyarlanabilir Davranış Puanında (VABS) 70'in üzerinde puan almaları gerekiyordu. Katılımcılar, dahil etme/hariç tutma kriterlerine (aşağıya bakınız) dayalı olarak CHARGE veri tabanından rastgele seçilmiştir ve tipik olarak gelişen çocuklar yaş, cinsiyet ve doğum yeri temelinde OSB vakalarıyla sıklık eşleştirilmiştir. CHARGE'a kayıt sırasında alınan önceki veriler, başlangıçta dahil etme kriterlerini taramak için kullanıldı, ailelerle ancak daha sonraki çalışmalar için iletişime geçilmesine izin vermişlerse iletişime geçildi. Katılımcının mevcut çalışmaya uygunluğunu değerlendirmek için GI ve sağlık anketleri ile birlikte bir telefon görüşmesi kullanıldı (aşağıda özetlenmiştir). Tüm katılımcılar ayrıca, mevcut çalışmaya kayıt oldukları sırada irritabilite, uyuşukluk, sosyal geri çekilme, stereotipik davranış, hiperaktivite ve uygunsuz konuşma alanlarındaki bozuklukları değerlendirmek için Aberrant Behavior Checklist (ABC) kullanılarak değerlendirildi. Kayıt sırasında veya bir önceki yıl içinde kullanılan ilaçlar ve/veya davranışsal terapiler toplandı ve kaydedildi. Bilinen başka bir GI patolojisi (çölyak hastalığı veya IBD), önceki ay içinde antibiyotik veya antifungal ilaç kullanımı, GI geçişini etkileyen ilaçlar (dışkı yumuşatıcılar) ve/veya yakın zamanda bir GI enfeksiyonuna dayalı kanıt varsa katılımcılar çalışma dışı bırakıldı. Çocuğun doktoru tarafından yapılan dışkı laboratuvar testlerinde. Ayrıca, bir nöbet bozukluğu, genetik bozukluk (örn. Fragile X sendromu, Tuberoz Skleroz Kompleksi), karaciğer veya pankreas hastalığı, kistik fibroz veya kronik enfeksiyon. Eğitimli beslenme uzmanları/klinisyenler, ilaçlar veya standart bir günlük multivitamin/mineral tablet dışındaki takviyeler gibi tamamlayıcı alternatif tedavilerin rehberliğinde beslenme takibi ve reçeteli diyet müdahaleleri alan çocuklar da çalışma dışı bırakıldı. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. kistik fibroz veya kronik enfeksiyon. Eğitimli beslenme uzmanları/klinisyenler, ilaçlar veya standart bir günlük multivitamin/mineral tablet dışındaki takviyeler gibi tamamlayıcı alternatif tedavilerin rehberliğinde beslenme takibi ve reçeteli diyet müdahaleleri alan çocuklar da çalışma dışı bırakıldı. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. kistik fibroz veya kronik enfeksiyon. Eğitimli beslenme uzmanları/klinisyenler, ilaçlar veya standart bir günlük multivitamin/mineral tablet dışındaki takviyeler gibi tamamlayıcı alternatif tedavilerin rehberliğinde beslenme takibi ve reçeteli diyet müdahaleleri alan çocuklar da çalışma dışı bırakıldı. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. Eğitimli beslenme uzmanları/klinisyenler, ilaçlar veya standart bir günlük multivitamin/mineral tablet dışındaki takviyeler gibi tamamlayıcı alternatif tedavilerin rehberliğinde beslenme takibi ve reçeteli diyet müdahaleleri alan çocuklar da çalışma dışı bırakıldı. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. Eğitimli beslenme uzmanları/klinisyenler, ilaçlar veya standart bir günlük multivitamin/mineral tablet dışındaki takviyeler gibi tamamlayıcı alternatif tedavilerin rehberliğinde beslenme takibi ve reçeteli diyet müdahaleleri alan çocuklar da çalışma dışı bırakıldı. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. Ancak, eğitimli bir beslenme uzmanı tarafından denetlenmeyen beslenme değişiklikleri alan çocuklar için diyet değişiklikleri belgelendi, ancak katılımcılar çalışmanın dışında tutulmadı. Benzer şekilde, ebeveynleri klinik değerlendirme yoluyla teşhis edilmemiş şüpheli gıda hassasiyetleri/hoşgörüsüzlükleri bildiren çocuklar da dışlanmadı, ancak belgelendi. tablo 1


                Çalışma katılımcılarının demografik özellikleri.
                # konu 26 20 35 6 29 21 34 7
                Yaş (medyan) 7.83 5.71 6.75 5.17 * # 7.75 6.58 7.09 5.08 * #
                IQR (5.46 - 11.23) (4.77 - 9.06) (5.50 - 8.33) (4.10 - 6.00) (5.25 - 10.54) (4.79 - 8.86) (5.56 - 8.50) (4.33 - 5.83)
                # erkek 19 15 24 5 25 17 32 6
                Kabızlık NA 8 NA 3 NA 7 NA 4
                İshal NA 4 NA 1 NA 5 NA 1
                Her ikisi (D+C) NA 0 NA 0 NA 1 NA 0
                IBS gibi NA 8 NA 2 NA 8 NA 2
                * ASD'den önemli ölçüde farklı (p < 0.05)
                # TD'den önemli ölçüde farklı (p < 0.05) 2.2. GI semptom değerlendirmesi


                Mevcut çalışmaya alınma sırasında, çalışma katılımcılarının ebeveynlerinden veya yasal vasilerinden, Roma III Pediatrik Fonksiyonel GI Bozuklukları için Tanı Anketi'ne ( Walker) dayanan ŞARJ GI geçmişi (GIH) anketini ve GI semptom anketini doldurmaları istendi. LS 2006 ). GIH başka yerde bildirilmiştir ( Chaidez ve ark. 2014 ) ve aşağıdaki semptomların sıklığını derecelendirir; karın ağrısı, gaz/şişkinlik, ishal, kabızlık, dışkıda ağrı, kusma, yiyeceklere duyarlılık, yutma güçlüğü, Likert ölçeğinde dışkıda kan ve kusmukta kan [ (0) = hiçbir zaman, (1) = nadiren, (2 ) = bazen, (3) = sık sık ve (4) = her zaman)]. Ebeveynlere/velilere, katılımcıların gıdalara alerjisi olup olmadığı, diyetlerinin kısıtlanıp kısıtlanmadığı, kim tarafından (çocuk, ebeveyn veya doktor) ve hangi nedenle olduğu soruldu; herhangi bir gıda semptomlara neden olduysa veya semptomları kötüleştirdiyse, çocuğun herhangi bir güçlü gıda sevmediği ve ne olduğu ve son olarak, herhangi bir klinik GI teşhisi konulmuş olup olmadığı. Ebeveynler/veliler, soruların her birini hem mevcut (son üç ay içinde) hem de önceki deneyimler için yanıtladı. GI semptom anketi 7 bölümden oluşuyordu, her bölümde katılımcının kabızlık, ishal veya irritabl bağırsak sendromu (IBS) kriterlerini karşılayıp karşılamadığını belirlemek için 1 ila 6 soru vardı. Tüm sorular, evet, hayır veya bilmiyorum şeklinde cevaplama seçenekleriyle çoktan seçmeli idi. Bölüm 1 ve 2, kabızlık için uygunluk kriterlerini belirledi. Bölüm 3 ve 4, diyare için uygunluk kriterlerini belirlemiştir. Bölüm 5 ve 6, varsa IBS benzeri semptomları belirlemiştir. Son olarak, 7. bölümde dışkılamanın son 6 ayda tutarlı olup olmadığı soruldu (bkz.Daha fazla ayrıntı için Ek Şekil 1 ).

                GI geçmişi ve semptom anketlerinde kabızlık, ishal veya IBS kriterlerini karşılayan katılımcılar , ilgili GI gruplarına (ASD GI veya TD GI ), kabızlık, ishal veya IBS kriterlerini karşılamayan ve tutarlı dışkılama yapan katılımcılara yerleştirildi. son 6 ay için şablonlar, karşılık gelen GI olmayan gruplarına (ASD NoGI veya TD NoGI ) yerleştirildi. Kabızlık, ishal veya IBS kriterlerini karşılamayan ancak son 6 ay içinde tutarsız dışkılama paternleri olan katılımcılar bu çalışmanın dışında tutulmuştur.

                Bu çalışma, California Eyaleti ve California Üniversitesi, Davis için kurumsal inceleme kurulları tarafından onaylandı. UC Davis IRB protokolüne uygun olarak veri toplamadan önce tüm çalışma katılımcıları için yasal bir vasiden bilgilendirilmiş onam alınır. 1.3. Kan toplama ve hücresel testler


                Her denekten asit-sitrat dekstroz Vacutainers (BD Biosciences; San Jose, Ca) içinde periferik kan toplandı. Kan, periferik kan mononükleer hücrelerini (PBMC) izole etmek için işlendi. Kan 2100 rpm'de 10 dakika santrifüjlendi, plazma toplandı ve kalan kan hücreleri lenfosit ayırma ortamı (Corning; Manassas, VA) üzerinde katmanlandı ve 1700 rpm'de 30 dakika santrifüjlendi. PBMC, buffy tabakasından toplandı ve Hanks dengeli tuz solüsyonu (Corning; Manassas, VA) ile yıkandı. PBMC, %10 Fetal Bovine Serum (Corning; Manassas, VA), 100 IU/ml penisilin (Invitrogen) ile tam ortam (RPMI 1640 (Invitrogen; Carlsbad, CA) içinde 300.000 hücre/kuyu konsantrasyonunda 96 oyuklu bir plakaya kaplandı. ; Carlsbad, CA) ve 100 IU/ml streptomisin (Invitrogen; Carlsbad, CA)). 1.4. Sitokin Analizi


                Hücre kültürünün ardından süpernatanlar toplandı ve sitokinlerin analizine kadar -80 °C'de saklandı. Stimülasyonun ardından pro-inflamatuar yanıtları değerlendirmek için sitokinler IL-1a, IL-1β, IL-6, IL-12 (p40 & p70) ve tümör nekroz faktörü (TNF)a ölçüldü. T hücre yanıtlarını değerlendirmek için IFNy ( TH 1), IL-4 ve IL-13 ( TH2) analiz edildi ve; bağışıklık düzenlemesini değerlendirmek için IL-10 ve dönüştürücü büyüme faktörü (TGF)β1 ölçüldü. Ek olarak, IL-5, IL-15 ve IL-17 sitokin seviyeleri, mukozal homeostaz, inflamasyon ve hastalıkla ilişkili oldukları için değerlendirildi. Sitokin analizi, bir çoklayıcı boncuk immünoanaliz (Millipore, Billerica, MA) kullanılarak yapıldı. Numuneler, üreticinin protokolüne göre çalıştırıldı. Kısaca, 25 μL numune antikorla eşleştirilmiş floresan boncuklarla inkübe edildi, yıkandı ve biotinlenmiş saptama antikorları ve ardından streptavidin-fikoeritrin ile inkübe edildi. Boncuklar daha sonra akış bazlı Luminex™ 100 süspansiyon dizi sistemi (Bio-Plex 200; Bio-Rad Laboratories, Inc.) kullanılarak analiz edildi. Bilinmeyen numune konsantrasyonunu belirlemek için Bio-plex Manager yazılımı tarafından standart eğriler oluşturuldu, referans sitokinler kit içerisinde üretici tarafından sağlanmıştır. TGFβ1 konsantrasyonu, üretici tarafından önerilen ek işlem adımlarından dolayı diğer sitokinlerden ayrı bir kit ile belirlendi. Numuneler, TGFβ1 için değerlendirilmeden önce bir asitleştirme aşamasına tabi tutulmuştur. Millipore kitinde kullanılan antikorlar tarafından aktif TGFβ1'i tespit etmek için gizli TGFβ formunu parçalamak için asit aktivasyonu gereklidir (Hale-Donze et al. 2001 ). 20 µL numune, 10 µL 1N HCl (Fisher Scientific; Pittsburg, PA) ile 30 dakika inkübe edildi, ardından 0,5M HEPES (Sigma-Aldrich) ile 10 µL 1.2N NaOH (Fisher Scientific; Pittsburg, PA) ilave edildi. ; St. Louis, MO) numuneleri nötr pH'a döndürmek için. Sitokinler için minimum saptanabilir miktar aşağıdaki gibidir: IFNy 0.8 pg/mL, IL-10 1.1 pg/mL, IL-12p40 7.4 pg/mL, IL-12p70 0.6 pg/mL, IL-13 1.3 pg/mL, IL -15 1,2 pg/mL, IL-17 0,7 pg/mL, IL-1α 9,4 pg/mL, IL-1β 0,8 pg/mL, IL-4 4,5 pg/mL, IL-5 0,5 pg/mL, IL-6 0.9 pg/mL, TGFβ1 9.3 pg/mL ve TNFa 0.7 pg/mL. Tespit sınırının altında olan numune konsantrasyonlarına, istatistiksel karşılaştırmalar için tespit sınırının yarısı olarak bir vekil değer verildi.

                TD çocuklarında GI semptomlarının düşük sıklığı nedeniyle ( Chaidez ve ark. 2014 ), bağışıklık tahlilleri için yalnızca 6 TD GI çocuğunu almada başarılı olduk ; ek olarak, TD GI katılımcılarının çoğu, diğer gruplardan önemli ölçüde daha gençti, belki de bu popülasyondaki geçici GI semptomlarını yansıtıyordu (tablo 1). Stimülasyondan sonra indüklenen sitokin seviyeleri için TD ve TD GI arasındaki ön karşılaştırmalar , iki grup arasında çok az fark olduğunu ortaya çıkardı ( Ek Şekil 2 ). Yaş ve numune boyutuyla ilgili endişeler nedeniyle, ASD gruplarının sitokin karşılaştırmalarını TD NoGI grubuna odaklamayı seçtik ve TD GI grubunu ileri analizlere dahil etmedik . 1.5. Haptoglobin (Zonulin) Genotiplemesi


                Haptoglobin ( Hp) genotipi immünoblot ile belirlendi. İmmüno blot analizi rutin olarak tarif edildiği gibi yapıldı; kısaca, plazma numuneleri %4-20 gradyanlı bir SDS poliakrilamid jeli ile elektroforezlendi ve poliviniliden diflorür membranlarına (Millipore, Bedford, MA, ABD) aktarıldı. Zarlar, bloke edici tamponda bloke edildi (Tris-tamponlu salin, %0.1 Tween 20, %5 BSA). Lekeler, bloke edici tampon (1:5000) içinde seyreltilmiş poliklonal anti-insan haptoglobin (Sigma-Aldrich; St. Louis, MO) ile inkübe edildi. Yıkandıktan sonra membranlar, blokaj tamponunda (1:5000) seyreltilmiş anti-tavşan Alexa Fluor 488 (Life Technologies; Carlsbad, CA) ile inkübe edildi. Western blot sinyali, bir kızılötesi tarama LI-COR Odyssey (LI-COR, Lincon, Nebraska, ABD) kullanılarak görselleştirildi. 2.6. Mikrobiyom Analizi


                Ebeveynlere daha sonra RNA içeren tüpler de dahil olmak üzere evde dışkı örnekleri toplamaları için toplama kapları verildi. Dışkı toplandıktan sonra numuneler hemen dondurucuya yerleştirildi ve 24 saat içinde dondurularak kliniğe getirildi. Toplam DNA, daha sonra PowerSoil DNA izolasyon kiti (Mobio) ile RNA'da korunan ve taşınan 0.25 gram dışkı örneklerinden ekstrakte edildi.

                16S rRNA geninin V3-V4 bölgelerinin amplifikasyonu, 338F ve 806R füzyon primerleri ile bir çift barkod sistemi kullanılarak Fadrosh ve arkadaşlarına ( Fadrosh ve arkadaşları, 2014 ) göre yapıldı. Amplikonlar daha sonra, Maryland Üniversitesi Tıp Fakültesi Genom Bilimleri Enstitüsü'ndeki Genomik Kaynak Merkezinde 300 bp çift uçlu protokol kullanılarak Illumina MiSeq üzerinde dizildi. Ham okumalar, phred puanları 3'ten düşükse ilk 3 ve son 3 bazın kaldırılması için önceden işlendi, ardışık 4 bazın ortalama phred kalite puanı 15'in altındaysa okuma sonu kırpıldı. Düzeltmeden sonra orijinal uzunluklarının %75'i daha sonra FLASH kullanılarak birleştirildi ( Magoc ve Salzberg 2011).) ortalama olarak ~ 90bp örtüşme ile. Birleştirilmiş okumalar, QIIME'de (sürüm 1.8.0) kırpılmış aynı barkod ve kalite ile bindirme sekansları ile çoğullandı ( Caporaso ve diğerleri 2010 ) (ayrıntılar için, lütfen Fadrosh ve diğerleri'ne bakın (Fadrosh ve diğerleri inceleniyor) ). %3'ten daha az farklılığa sahip benzer diziler, USEARCH (v5.2.32) kullanılarak bir araya toplandı ( Edgar 2010 ) ve de novo kimera tespiti UCHIME v5.1'de yapıldı ( Edgar ve diğerleri 2011 ). Taksonomik sıralar, Ribozomal Veritabanı Projesi (RDP) Naive Bayes Sınıflandırıcı v.2.2 ( Wang ve diğerleri , 2007 ), 16S rRNA dizilerinin önceden oluşturulmuş bir greengenes veri tabanına kesme olarak 0.8 güven değerleri kullanılarak her diziye atanmıştır (Ağustos, 2013 vers.) (McDonald ve ark. 2012 ).

                Isı haritası, çubuk grafiği istatistiksel paket R (v3.2.1) ve Phyloseq R paketleri kullanılarak oluşturulmuştur ( McMurdie ve Holmes 2013 ). 16S rRNA işaretleyici geninden tahmin edilen metagenom fonksiyonel içeriği PICRUSt kullanılarak gerçekleştirilmiştir ( Langille ve diğerleri, 2013 ). Farklı kategoriler arasında çoğunlukla farklı şekilde sunulan KEGG fonksiyonel kategorilerinin bağımsızlığından sapmaları göstermek için R'de bir Cohen-Dostu ilişkilendirme grafiği ( Cohen 1980 , Friendly 1992 ) üretildi. 2.7. istatistiksel analiz


                Bir Shapiro-Wilk testi kullanılarak verilerin analizi, sitokin verilerinin dağılımının normal olarak dağılmadığını gösterdi. Ne log transformasyonu ne de karekök transformasyonu tüm sitokin dağılımlarını normalleştirmedi. Bu nedenle gruplar arasında sitokin düzeylerini karşılaştırmak için Kruskal-Wallis sıralama toplamı testi kullanıldı. Veriler medyan değerler (çeyrekler arası aralıklar) olarak ifade edilir. Gruplar arasındaki sitokin düzeylerini karşılaştırmak için post-hoc analizlerde bir Mann-Whitney parametrik olmayan U-testi (birden çok karşılaştırmayı düzeltmek için bir Holm adım aşağı prosedürü ile) kullanıldı ve ayarlanmış P değerleri <0.05 istatistiksel olarak anlamlı kabul edildi. Aykırı değerler ROUT kullanılarak kaldırıldı. Davranışsal veriler (ABC alt ölçekleri) ayrıca bir Mann-Whitney parametrik olmayan U-testi kullanılarak analiz edildi, aykırı değerler ROUT kullanılarak çıkarıldı. Mikrobiyota verileri iki yönlü ANOVA'ya tabi tutuldu. Bu testler, çoklu karşılaştırmalar için dereceli gecikme keşif oranı (FDR) düzeltmesi kullanılarak 0,05 anlamlılık düzeyinde yapılır. Haptoglobin genotip verileri, iki kuyruklu bir ki-kare testi kullanılarak analiz edildi.

                Git: 3. Sonuçlar

                3.1. Bağışıklık stimülasyon testleri


                3.1.1 Bazal stimülasyon (yalnızca medya)


                Yalnızca ortam ile kültürlenen PBMC'den hücre kültürü süpernatanlarında, hem ASD NoGI hem de TD NoGI çocukları ile karşılaştırıldığında ASD GI grubunda TGFβ1 üretiminin azaldığı gözlendi ( p < 0.05) (Şekil 1). Ayrıca, TD NoGI'ye kıyasla ASD GI'de artan IL-6 eğilimine dikkat çektik ancak istatistiksel anlamlılığa ulaşmadık ( p = 0.0932) (Tablo 2).
                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f1.jpg
                Şekil 1
                Yalnızca ortamla 24 saat uyarıldıktan sonra TGFβ1 üretimi; TLR-4 agonisti, LPS; NOD agonisti, PGN; veya T hücre mitojeni, PHA. ASD NOGI , ASD GI ve TD NOGI arasındaki medyanları ve çeyrekler arası aralığı karşılaştırma . pg/mL olarak gösterilen TGFβ1 konsantrasyonu. * p-değeri < 0.05'i gösterir. Tablo 2


                GI semptomları olmayan ASD (ASD NOGI ), GI semptomları olan ASD (ASD GI ) ve GI olmayan tipik gelişen çocuklar (TD NOGI ) arasında in vitro 24 saat sonra ortamda PBMC sitokin üretiminin karşılaştırılması . Ortanca ve çeyrekler arası aralıklar olarak sunulan veriler.
                IL-1α 4.70
                (4.70-4.70)
                4.70
                (4.70-4.70)
                4.70
                (4.70-4.70)
                IL-1β 0.40
                (0.40-2.0)
                0.40
                (0.40-4.33)
                0.40
                (0.40-1.21)
                IL-6 3,73
                (1,52-15,73)
                9.65
                (4.05-17.18)
                5,25
                (2,62-9,44)
                IL-12p40 3.70
                (3.70-3.70)
                3.70
                (3.70-3.70)
                3.70
                (3.70-3.70)
                IL-12p70 0.30
                (0.30-0.39)
                0.30
                (0.30-0.73)
                0.30
                (0.30-0.63)
                TNFa 4,47
                (2,91-10,04)
                8,03
                (3,66-17,58)
                6,53
                (3,74-9,65)
                IFNy 1,93
                (0,40-5,96)
                1,36
                (0,62-2,19)
                1.26
                (0.4-2.72)
                IL-4 2,25
                (2,25-2,25)
                2,25
                (2,25-2,25)
                2,25
                (2,25-2,25)
                IL-13 0,65
                (0,65-0,92)
                0,65 #
                (0,65-0,65)
                0.65
                (0.65-1.57)
                IL-10 4.84
                (3.89-7.34)
                5,93
                (4,08-6,97)
                6.32
                (4.11-9.81)
                TGFβ 2.070 *
                (1.235-3.409)
                1.523 #
                (1,009-1,738)
                2996
                (1.347-5.351)
                IL-5 0.25
                (0.25-0.25)
                0.25
                (0.25-0.25)
                0.25
                (0.25-0.25)
                IL-15 0.60
                (0.60-0.60)
                0.60
                (0.60-0.60)
                0.60
                (0.60-0.60)
                IL-17 0,35
                (0,35-0,35)
                0,35
                (0,35-0,35)
                0,35
                (0,35-0,35)
                Ayrı bir pencerede aç
                * ASD GI ile ASD GI no'yu karşılaştırırken p değeri < 0.05
                # p değeri < 0.05, ASD GI ile TD'yi karşılaştırırken
                ‡ GI no ASD ile TD'yi karşılaştırırken p değeri < 0.05
                3.1.2. TLR 4 Stimülasyonu


                TLR-4 ligandı ile stimülasyonun ardından, (Tablo 3), ASD NoGI grubundan PBMC kültürlerinden elde edilen süpernatanlar, TD NoGI'ye kıyasla yaklaşık 1.5 kat daha fazla IL-1α ( p = 0.0003) ve TNFa ( p = 0.0254) üretti ve ayrıca IL- 1β'yi ( p = 0.0027) önemli ölçüde arttırdı (Şekil 2a-c). IL-6 üretimi de TD NoGI grubuna kıyasla ASD NoGI grubunda bir yükselme eğilimi gösterdi, ancak anlamlılığa ulaşmadı. IL-15, IL-17 dahil olmak üzere TD NoGI ile karşılaştırıldığında ASD NoGI'de mukoza ile ilişkili sitokinlerin düşük seviyeleri gözlendi (p < 0.02;Şekil 2d-e) ve IL-12p70 (p < 0.02; Tablo 3).
                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f2.jpg
                şekil 2
                TLR-4 agonisti LPS ile stimülasyondan sonra indüklenen sitokin tepkileri. IL-1a (a), TNFa (b), IL-1p (c), IL-15 (d), IL-17 (e) ve IL-5 (f)'den gelen yanıtlar gösteriliyor. pg/mL olarak gösterilen konsantrasyonlar. Kutu ve bıyık grafikleri olarak gösterilen veriler. *p-değeri < 0.05'i gösterir. Tablo 3


                ASD NOGI , ASD GI ve TD NOGI arasında TLR-4 agonisti ile 24 saatlik stimülasyondan sonra PBMC sitokin üretiminin karşılaştırılması . Ortanca ve çeyrekler arası aralıklar olarak sunulan veriler.
                IL-1α 3.959 ‡ *
                (3,615-4,376)
                3.160
                (1.602-4.036)
                2.660
                (1.115-3.913)
                IL-1β 12.506 ‡
                (9.304-17.562)
                10.727
                (7,888-15,632)
                9.782
                (6.370-12.298)
                IL-6 35.049
                (26.923-46.236)
                33.143
                (20.277-41.781)
                31.468
                (21.858-47.848)
                IL-12p40 43,69
                (19,39-75,11)
                39.28
                (19.39-96.25)
                57.64
                (36.21-75.11)
                IL-12p70 5,35 ‡
                (3,34-7,46)
                7.46
                (3,588-9,65)
                7,63
                (5,35-9,65)
                TNFa 4.072 ‡
                (2.904-5.139)
                4.084
                (2.765-5.959)
                3.071
                (2.074-3.989)
                IFNy 159.90
                (53.63-293.20)
                253.50
                (85.24-878)
                168.90
                (75.51-288.20)
                IL-4 2.25
                (2.25-4.16)
                2.25
                (2.25-11.13)
                2.25
                (2.25-11.13)
                IL-13 19.50
                (13.48-28.99)
                20.80
                (15.14-30.88)
                19.50
                (14.16-24.65)
                IL-10 9.253
                (4,421-10,885)
                6.151
                (3.007-10.047)
                6048
                (3,904-8,017)
                TGFβ 1.981
                (1.043-3.899)
                1.179 #
                (820.70-2.010)
                2.590
                (1.261-4.745)
                IL-5 1,36*
                (0,25-3,39)
                3.39 #
                (2.61-6.35)
                2.43
                (1.62-3.05)
                IL-15 19.50 ‡
                (13.48-28.99)
                20.80
                (15.14-30.88)
                19.50
                (14.16-24.65)
                IL-17 0,35 ‡ *
                (0,35-0,35)
                0.48 #
                (0.35-3.24)
                3.28
                (1.00-6.145)
                Ayrı bir pencerede aç
                * ASD GI ile ASD GI no'yu karşılaştırırken p değeri < 0.05
                # p değeri < 0.05, ASD GI ile TD'yi karşılaştırırken
                ‡ GI no ASD ile TD'yi karşılaştırırken p değeri < 0.05
                ASD GI grubu ile ASD NoGI grubu karşılaştırıldığında, IL-5 dahil olmak üzere bir dizi sitokin üretiminde önemli artışlar bulduk ( p = 0.0006;Şekil 2f), IL-17( p = 0.0057;Şekil 2e) ve IFNy ( p = 0.0531) ve IL-15 ( p = 0.0829;Şekil 2d). ASD NoGI'ye kıyasla ASD GI'de IL-1α seviyeleri azalmıştır ( p = 0.0150 ;Şekil 2a). TD NoGI ile karşılaştırıldığında ASD'de GI sitokin üretimi IL-5 için arttı ( p = 0.0021;Şekil 2f) ve artan IFNy ( p = 0.0820) ve TNFa ( p =0.0546) üretimine yönelik anlamlı olmayan bir eğilim vardı ; ancak IL-17 azaldı ( p = 0.0186;Şekil 2e).

                Dikkat çekici bir şekilde, TGF-p1 ASD azalmıştı GI ASD her ikisi ile karşılaştırıldığında nogi ve TD nogi ( p <0.007;Şekil 1).

                3.1.3. NOD 1&2 Stimülasyonu


                Genel olarak, NOD stimülasyonunu takiben, ASD NoGI grubunun PBMC kültürlerinden elde edilen süpernatanlarda sitokin üretimi, ASD GI veya TD NoGI ile karşılaştırıldığında daha düşüktü (Tablo 4). ASD NoGI , IL-1α ve IL-1β miktarının üçte birinden daha azını üretti ( p < 0.001), IL-6, IL-12p40, TNFa, IFNγ için azaldı ( p < 0.03) ve non- önemli bir eğilim, IL-5, IL-10 ve IL-13 (azalma p TD ile karşılaştırıldığında <0.08) nogi (Şekil 3a-f). ASD GI'de , ASD NoGI grubuna kıyasla IL-1β üretiminde 3 kat artış, IFNy miktarının iki katından fazla ( p < 0.02) ve artmış TNFa için anlamlı olmayan bir eğilim ( p = 0.0647) vardı (Şekil 3b,e &f). Düzenleyici sitokinler IL-10 ve TGFβ, ASD GI grubunda TD NoGI'ye kıyasla azalmıştı ; ancak, çoklu karşılaştırmalar için istatistiksel düzeltmeden sonra farklılıklar anlamlı değildi.
                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f3.jpg
                Figür 3
                NOD1 ve 2 agonist PGN ile stimülasyondan sonra indüklenen sitokin tepkileri. IL-1a (a), IL-1p (b), IL-6 (c), IL-12p40 (d), IFNy (e) ve TNFa (f)'den yanıtlar gösteriliyor. pg/mL olarak gösterilen konsantrasyonlar. Kutu ve bıyık grafikleri olarak gösterilen veriler. *p-değeri < 0.05'i gösterir. Tablo 4


                ASD, ASD GI ve TD arasında NOD agonisti ile 24 saatlik stimülasyondan sonra PBMC sitokin üretiminin karşılaştırılması . Ortanca ve çeyrekler arası aralıklar olarak sunulan veriler.
                IL-1α 31.09 ‡
                (4,70-103,40)
                58.80
                (4.70-576.40)
                104.30
                (60.65-395.80)
                IL-1β 202.6 ‡ *
                (31.81-327.70)
                638.90
                (156.40-6415)
                713.10
                (286.70-3596)
                IL-6 5.702
                (2.187-10.883)
                6,974
                (5,174-12,261)
                8919
                (6,570-15,244)
                IL-12p40 10,82 ‡
                (3,70-36,47)
                24.18
                (3.70-38.21)
                24.29
                (10,82-51,06)
                IL-12p70 0.30 ‡ *
                (0.30-0.30)
                0.30
                (0.30-4.00)
                0.30
                (0.30-5.80)
                TNFa 324.10 ‡
                (102.7-1.022)
                488.60
                (255-3.053)
                850,40
                (385,50-1,442)
                IFNy 40.82 ‡*
                (15.06-58.19)
                114.70
                (30,37-461,60)
                72,63
                (43,72-192)
                IL-4 2,25
                (2,25-2,25)
                2,25
                (2,25-2,25)
                2,25
                (2,25-2,25)
                IL-13 20.76
                (8.29-28.01)
                16.17
                (8.29-57.57)
                29.32
                (9.66-58.75)
                IL-10 434.60
                (163.60-1.080)
                473.10
                (273.60-1.046)
                719.40
                (466.20-1.271)
                TGFβ 1.118
                (837.20-1.877)
                771.10
                (595.80-2.243)
                2.169
                (535.40-5.136)
                IL-5 2.22
                (1.22-3.21)
                2,43
                (1,72-4,67)
                2,72
                (2,02-4,99)
                IL-15 0.60
                (0.60-2.58)
                0.60
                (0.60-3.51)
                2.38
                (0.60-3.51)
                IL-17 23.79
                (8.13-57.22)
                15.66
                (7.21-30.28)
                16.72
                (5.59-29.54)
                Ayrı bir pencerede aç
                * ASD GI ile ASD GI no'yu karşılaştırırken p değeri < 0.05
                # p değeri < 0.05, ASD GI ile TD'yi karşılaştırırken
                ‡ GI no ASD ile TD'yi karşılaştırırken p değeri < 0.05
                3.1.4. PHA uyarımı


                Genel olarak, PHA stimülasyonunu takiben gruplar arasında çok az önemli fark vardı (Tablo 5). ASD NoGI grubunda TD NoGI grubuna kıyasla artmış IL-15 bulduk ( p = 0.0033). T üretimini artan H 1 sitokin IFN-y ve TGF-P 1 düzenleyici sitokin üretimi OSB gözlenmiştir azalma GI TD ile karşılaştırıldığında grup nogi (p <0.01). ASD NoGI ile karşılaştırıldığında ASD GI'de TGFβ1'de azalma ve IFNγ artışında da benzer bulgular bulduk ( p < 0.04). Tablo 5


                ASD NOGI , ASD GI ve TD NOGI arasında T-hücre mitojeni ile 24 saatlik uyarımdan sonra PBMC sitokin üretiminin karşılaştırılması . Ortanca ve çeyrekler arası aralıklar olarak sunulan veriler.
                IL-1α 64.17
                (4.70-97.35)
                40.11
                (4.70-85.84)
                52.50
                (4.70-77.40)
                IL-1β 419.50
                (205.00-732.80)
                578.90
                (329.30-771.40)
                405.00
                (236.70-709.30)
                IL-6 6.851
                (5.085-8.863)
                6.338
                (5.814-11.464)
                6.434
                (5,060-9,977)
                IL-12p40 3,70 ‡
                (3,70-3,70)
                3.70 #
                (3.70-3.70)
                3,70
                (3,70-20,97)
                IL-12p70 21.65
                (17.05-28.68)
                21.65
                (12.56-28.94)
                17.05
                (14.23-27.01)
                TNFa 1.438
                (900.00-2.205)
                1.706
                (985.20-2.851)
                1.477
                (581.20-2.215)
                IFNy 810.30 *
                (431.20-1,208)
                1283 #
                (822.80-1,747)
                591.80
                (395-1.284)
                IL-4 558.50
                (228.00-893.90)
                462.30
                (392.20-682.90)
                488.60
                (292.50-899.60)
                IL-13 1.590
                (870.80-2.472)
                1.452
                (1.116-2.743)
                1.621
                (1.223-2.518)
                IL-10 2.020
                (1.501-3.739)
                2.585
                (1.694-3.452)
                2.452
                (2.035-3.323)
                TGFβ 2.070 *
                (1.235-3.409)
                1.523 #
                (1,009-1,738)
                2.996
                (1.347-5.351)
                IL-5 205.10
                (129.60-331.70)
                224.60
                (120.80-429.30)
                237.20
                (180-496.80)
                IL-15 12.31 ‡
                (6.40-16.20)
                6.88
                (1.195-15.23)
                6.10
                (2.98-8.43)
                IL-17 408.50
                (265.60-647.50)
                412.10
                (277.90-583.30)
                408.50
                (279.20-731.60)
                Ayrı bir pencerede aç
                * ASD GI ile ASD GI no'yu karşılaştırırken p değeri < 0.05
                # p değeri < 0.05, ASD GI ile TD'yi karşılaştırırken
                ‡ GI no ASD ile TD'yi karşılaştırırken p değeri < 0.05 3.2. Davranış Puanları


                İki ASD grup arasında ABC değerlendirmenin sonuçları karşılaştırarak sonra biz ASD bulundu GI ASD kıyasla daha atipik davranış skorları nogi (Şekil 4). OSB GI grubundaki çocuklar, sinirlilik ve ajitasyon, sosyal geri çekilme ve uyuşukluk ve hiperaktivite ve uyumsuzluk için ABC alt ölçek puanlarında artışa sahipti ( p < 0.02;Şekil 4a-c) ASD NoGI ile karşılaştırıldığında .
                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f4.jpg
                Şekil 4
                ASD NOGI ve ASD GI arasındaki ABC alt ölçek karşılaştırmaları . Sinirlilik/ajitasyon puanları gösterme (a); sosyal geri çekilme/uyuşukluk skorları (b); ve hiperaktivite/uyumsuzluk yaraları (c). Kutu ve bıyık grafikleri olarak gösterilen veriler. *p-değeri < 0.05'i gösterir. 3.3. haptoglobin analizi


                Hp genotiplerinin analizi, ASD deneklerinde Hp2 geninin, istatistiksel anlamlılığa ulaşmayan GI durumundan bağımsız olarak TD grupları üzerinde aşırı temsil eğilimi gösterdi (p = 0.077; Ek Tablo 1 ). Bununla birlikte, ASD arasında önemli farklı bir dağılım oluştu GI TD ile karşılaştırıldığında GI Hp2-2 genotipinin bir fazla gösterimi ile (p <0.01) ve az temsil ASD çocuklarda Hp1-1 genotipi GI . ASD NoGI ve TD NoGI veya ASD GI ve ASD NoGI arasında hiçbir fark gözlenmedi . 3.4. Mikrobiyom analizi


                Boşluk istatistik analizi, numunelerimizde ( Ek Şekil 3 ), daha önce tarif edilen üç mikrobiyal enterotip ile korelasyon gösteren üç kümenin varlığını ortaya koydu ( Arumugam ve diğerleri, 2011 ). İlk küme, zenginleştirilmiş Bacteroides iken, ikinci küme, tanımlanmış herhangi bir baskın bakteri türünden yoksundu. Son olarak, üçüncü kümede Prevotella'nın hakim olduğu görüldü. İlginç bir şekilde, ikinci kümede, GI semptomlarından bağımsız olarak yalnızca OSB tanısı olan çocuklar tarafından temsil edilen iki alt grup gözlemledik (yani, OSB GI artı OSB NoGI'nin birleşik grubu ) (Şekil 5a). Üçüncü kümede, nörogelişimsel durumlarına bakılmaksızın (yani ASD NoGI artı TD NoGI ) GI semptomları olmayan deneklerin baskın olduğu gözlendi (Şekil 5b). Denekler, GI semptomlarının varlığına veya yokluğuna göre ayrıldığında, göreceli bolluk analizi, ASD GI ve TD GI çocukları arasında aile düzeyinde mikrobiyom bileşiminde farklılıklar gösterdi (Şekil 6). Spesifik olarak, Bacteriodaceae, Lachnospiraceae, Prevotellaceae ve Ruminococcaceae , TD GI ile karşılaştırıldığında ASD GI grubunda daha bol göründü . İlginç bir şekilde, ASD NoGI ve TD NoGI grupları arasında aynı farklılıklar saptanmadı . Cohen-Dostu ilişkilendirme grafiği, veri setimizde metagenom fonksiyonel içeriğini tahmin etmek için kullanıldı ( Ek Şekil 4 ). Bu analizler, ASD GI ve TD GI denekleri arasında ve ASD NoGI ve TD NoGI arasında bazı yol temsillerinde güçlü farklılıklar gösterdi.. Spesifik olarak, amino şekerler ve nükleotit şekerler yolları ASD NoGI'ye kıyasla ASD GI'de aşırı temsil edilirken taşıyıcı yollar yetersiz temsil edildi . ASD temsil altında nişasta ve sükroz metabolizma yolları da edildi nogi , ama biraz ASD içine regüle GI . Son olarak, iki bileşenli sistemle ilişkili yollar, TD GI'de güçlü bir şekilde yukarı regüle edildi ve ASD GI'de yetersiz temsil edildi .
                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f5.jpg
                Şekil 5
                Örnekler arasındaki Unifrac mesafelerinin Temel Koordinatları analizi. (a) Kümenin birlikteliğiyle renklendirilen ve nörogelişimsel koşulla şekillendirilen örnekler. (b) Kümenin birlikteliği ile renklendirilen ve GI semptomlarının varlığı ile şekillendirilen örnekler. İkinci kümede yer alan otistik hastaların altın potansiyel alt gruplarında ve üçüncü kümede GI semptomları olmayan deneklerin baskınlığında,

                Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms955329f6.jpg
                Şekil 6
                Farklı denek kategorilerinden toplanan örneklerin mide-bağırsak mikrobiyotasında aile düzeyinde nispi bolluğu gösteren çubuk grafiği

                Git: 4. Tartışma


                Biz ASD çocukların bu yazıda, GI ASD çocuklara kıyasla TLR-4 agonisti LPS'ye maruz bırakıldıktan sonra, IL-5, IL15 ve IL-17 de dahil olmak üzere mukoza ilgili sitokinlerin seviyelerini, yüksek üretilen nogi . Ayrıca, TGF-P 1 üretimi, sürekli ASD çocuklarda azalmıştır GI ASD hem karşılaştırıldığında koşullar çoğunluğu altında incelendi nogi ve TD nogi . Bağışıklık bulgulara ek olarak, ASD içinde mikrobiyomları kompozisyon farklılıkları bulunan GI TD kıyasla GI ASD ve farklılıkları çeşitli taşıyıcılar ve metabolomic yolları GI ASD karşılaştırıldığında hastaların nogi . ASD GIgrup ayrıca, ASD NoGI grubundaki çocuklara kıyasla, ABC alt ölçeklerinde sinirlilik ve ajitasyon, sosyal geri çekilme ve uyuşukluk ve hiperaktivite ve uyumsuzluk için daha yüksek puan aldı . Bu ön veriler, ASD'de mikrobiyom, bağışıklık sistemi ve davranışsal sonuç arasında olası bir ilişki olduğunu göstermektedir.

                Mikrobiyota ve mukozal bağışıklık fonksiyonu arasında iki yönlü bir bağlantı vardır. Gelişim sırasındaki simbiyotik rollerine ek olarak, bu karmaşık ilişki yaşam boyunca homeostazı sağlamaya devam eder. Örneğin, bağışıklık tepkisi, REGIIIα, α-defensinler ve β-defensinler, IgA ve kommensal bakterilere özgü T hücreleri gibi antimikrobiyal moleküllerin üretimi dahil olmak üzere birkaç farklı mekanizma yoluyla bağırsak mikrobiyotasının bileşimini şekillendirebilir ( Hooper et al. diğerleri 2012 , Ostaff ve diğerleri 2013). Ek olarak, bir enflamatuar yanıt ve diğer bağışıklık molekülleri ile birlikte reaktif oksijen türlerinin üretimi, belirli bakteri türlerinin tercihli büyümesine yol açarak mikrofloranın bileşimine katkıda bulunabilir. Örneğin, konakçıdan türetilen nitratın farelerde E. Coli büyümesini desteklediği bulunmuştur ( Spees ve diğerleri 2013 , Winter ve diğerleri. 2013 ), oysa Nos2 geninde bir mutasyona sahip olan ve indüklenebilir nitrik oksit sentazda eksik olan fareler, E. coli büyümesini desteklemez ( Winter ve ark. 2013 ). Ayrıca, NOD2, NLRP6 ve TLR bağışıklık yollarındaki değişiklikler dysbiosis'e yol açabilir ve çeşitli GI koşullarıyla bağlantılıdır ( Netea ve diğerleri 2004 , Eckmann ve Karin 2005 ,Vijay-Kumar ve ark. 2010 , Elinav ve ark. 2011 , Jiang ve ark. 2013 ).

                Tersine, mikrobiyota tam gelişmiş bir bağışıklık sistemi sağlamak için çok önemlidir ( Lee ve Mazmanian 2010 ). Mikropsuz (GF) fareler, daha küçük ve daha az Peyer yamaları, daha küçük mezenterik lenf düğümleri, izole edilmiş lenfoid foliküllerin yokluğu ve ayrıca salgı IgA'daki eksiklikler ile bağırsakla ilişkili lenfoid dokunun (GALT) değişmiş gelişimi gibi birçok bağışıklık anormalliği gösterir. azaltılmış intraepitelyal CD8+ T hücreleri ve azaltılmış lamina propria bağışıklık hücreleri, CD4+ T hücreleri dahil ( Lee ve Mazmanian 2010 , Hooper ve ark. 2012 ). Azaltılmış CD4+ T hücresi ve daha küçük germinal merkezler, GF farelerinin dalaklarında görülür ve bu, mikrofloranın, GALT'a ek olarak sistemik/periferik bağışıklık sistemini etkilemekten sorumlu olduğunu gösterir (Lee ve Mazmanyan 2010 ). GF fareleri ayrıca, sosyal davranışlarda, özellikle sosyal kaçınmada ve sosyal yenilik için azaltılmış tercihte bozulmalar dahil olmak üzere davranışsal anormallikler sergiler ( Desbonnet ve diğerleri, 2014 ). İlginç bir şekilde, sosyal kaçınmadaki eksiklikler, GF farelerinde bakteri kolonizasyonu ve mikrobiyotanın kurulmasından sonra tersine döndü.

                ASD NoGI'ye kıyasla ASD GI'de artan IL-5, IL-15 ve IL-17 üretiminin mukozal bağışıklık fonksiyonu için bir takım etkileri vardır. IL-5, antikor sınıfı değişimi için önemli bir sitokindir ve mukozal dokulardaki ana antikor sınıfı olan IgA'ya sınıf geçişini destekler ( Harriman ve diğerleri, 1988 ). IgA'nın patojenik bakteriler, virüsler ve toksinlerden bağırsak korumasında ve ayrıca bağırsak homeostazını sürdürmede rol oynadığı gösterilmiştir ( Mantis ve ark. 2011).). IL-15, makrofajlar, dendritik hücreler (DC) ve epitel hücreleri gibi doğuştan gelen bağışıklık hücreleri tarafından üretilir; ve T hücresi proliferasyonunu, hayatta kalmasını ve sitokin üretimini destekler. Aynı zamanda, NK hücre sitokin üretimi, sitotoksisite ve hayatta kalmanın yanı sıra B hücresinin hayatta kalması ve izotip değişiminin düzenlenmesinde rol oynar ( Stvceva ve diğerleri, 2006 ). Bağırsakta, IL-15 bağırsak epitel hücrelerinin proliferasyonunu indükleyebilir ve intraepitelyal T hücreleri üzerindeki mukozal yapışma integrini aEβ7'nin ekspresyonunu etkileyebilir ( Stvceva ve diğerleri, 2006 ). IL-15'in ayrıca çölyak hastalığı olan hastaların bağırsak mukozasında aşırı eksprese edildiği bulunmuştur ve epitel hasarına katkıda bulunduğu düşünülmektedir ( Mention ve ark. 2003).). Ayrıca, yakın tarihli bir çalışma, IL-15'in DC'de IL-12p70 ve IL-23 üretimini indükleyerek bağırsakta indüklenmiş düzenleyici T hücresi (Treg'ler) oluşumunu bloke ettiğini göstermiştir ( DePaolo ve diğerleri, 2011 ). Normal olarak, mezenterik lenf düğümlerinde bulunan DC, TGFβ1 ve retinoik asit (RA) tarafından hazırlandıktan sonra Treg oluşumunu indükler ( Coombes ve Powrie 2008 ). Bununla birlikte, IL-15 varlığında, RA T giden pro-inflamatuar sitokin üretimini arttırır , H 1 baskının eğri, ya da T, IL-6 potansiyel ek mevcudiyeti ile , H 17 farklılaşması ( DePaolo ve ark. 2011 ). Son olarak, ASD NoGI'ye kıyasla ASD GI'de artmış IL-17 gözlendive önemli bir inflamatuar mukozal sitokindir ve Crohn hastalığı, çölyak hastalığı ve IBD gibi GI bozukluklarında rol oynar ( Iwakura ve Ishigame 2006 , O'Connor ve diğerleri 2010 , Lahdenpera ve diğerleri 2012 , Huppler ve diğerleri 2014 ). IL-17, T hücrelerinin hazırlanması ve nötrofillerin işe alınması için önemlidir ve ayrıca IL-1, IL-6 ve TNFa gibi inflamatuar sitokinleri üretmek için endotelyal hücreler, epitelyal hücreler, nötrofiller ve makrofajlar üzerinde etkilidir ( Iwakura ve Ishigame 2006 , O' Connor ve diğerleri 2010). Bağışıklık tepkilerinin fetal gelişim üzerindeki rolünü değerlendiren bir fare modelinde yapılan son araştırmalar, gelişmekte olan beyne doğrudan IL-17 enjeksiyonunun erken beyin aşırı büyümesine ve OSB ile ilgili davranışlara yol açtığını keşfetti ( Choi ve ark. 2016 ). Bu nedenle, ASD GI'de artan IL-17'nin etkileri, mukozal sonuçların yanı sıra davranışsal sonuçlara da sahip olabilir.

                ASD grupları (ASD GI ve ASD NoGI ) arasındaki büyük bir fark , test edilen uyarıcı koşulların çoğunda meydana gelen TGFβ1 üretiminin azalmasıydı ve güçlü bir şekilde bağışıklık düzenlemesinde bir dengesizlik olduğunu gösteriyor. Biz ve diğerleri, daha önce ASD'li yetişkinlerin ve çocukların plazmasında TGFβ1 düzeylerinin azaldığını ( Okada ve ark. 2007 , Ashwood ve ark. 2008 ) ve düşük plazma TGFβ1 düzeyleri ile daha kötü davranış puanları arasındaki ilişkiyi ( Ashwood ve ark. 2008 ). Ayrıca, ASD'li bireylerde mikroRNA'ları (miRNA'lar) araştıran son çalışmalar, çeşitli doku örneklerinde ASD'li bireylerde farklı şekilde eksprese edilmiş miRNA'lar bulmuştur, bu da TGFβ1 yollarının kontrolünde değişiklikler anlamına gelir (Mundalil Vasu et al. 2014 , Ander ve ark. 2015 , Huang ve diğerleri. 2015 ). TGFβ sinyali, nörogelişimde ve immün homeostazda önemli bir rol oynar. TGFβ ailesi, nöral büyümeyi, sinaps oluşumunu düzenlemeye, akson oluşumunu başlatmaya, nöral göçe katılır ve ayrıca sinaptogenez ve hipokampal sinaptik plastisitede rol oynayabilir ( Krieglstein ve ark. 2011 ). Azalan TGFβ1, bu süreçlerin çoğunu potansiyel olarak etkileyebilir ve ayrıca nöronal fonksiyonda değişikliklere yol açabilen inflamatuar immün yanıtların kontrolünü bozabilir.

                Hücresel düzeyde, artan IL-17 ve azalan TGFβ1, T hücresi alt gruplarında, Treg'lerden uzaklaşarak ve daha enflamatuar bir TH 17 hücresine doğru bir kaymayı temsil edebilir . Yakın tarihli bir çalışma, Treg'ler için gerekli olan transkripsiyon faktörünün ekspresyonunun azaldığını ve TH 1, TH 2 ve TH 17 soyları için önemli olan transkripsiyon faktörlerinde artışlar bulduğunu bildirmiştir ( Ahmad ve ark. 2016).). Bağırsakta homeostazı sürdürmek, önemli faydalı mikroplara tolerans sağlayan ve potansiyel patojenik mikroplara direnen ve bağışıklık sisteminin bu ayrımı yapma ve uygun şekilde yanıt verme yeteneğine dayanan çok önemli bir dengeleme eylemidir. Geleneksel olarak, transkripsiyon faktörü RORyt eksprese edilir ve TH 17 hücrelerinin farklılaşmasında rol oynar, Foxp3 ise düzenleyici T hücre farklılaşmasında rol oynar ( Korn ve diğerleri 2009 , Harrison ve Powrie 2013 ). Bununla birlikte, son araştırmalar, bağırsakta hem Roryt hem de Foxp3'ü eksprese eden, IL-17 yerine düzenleyici sitokin IL-10 üreten ve işlevsel olarak Treg'lere eşdeğer olan T hücresi popülasyonlarını da bulmuştur ( Lochner ve ark. 2008).). Mikrobiyota, GF farelerinde görülen kolonik Rorγ+ T hücrelerinin oranındaki azalma ve ardından çeşitli bakteri türleri tarafından kolonizasyondan sonraki artışlarla gösterilen Rorγ+ Treg'lerin indüklenmesinde önemli bir rol oynar ( Sefik ve ark. 2015 ), yine, immun-mikrobiyota ilişkisinin önemi. Foxp3'ün stabilitesini araştıran çalışmalar, bir zamanlar Foxp3'ü eksprese eden ve folat reseptörü 4, CD103 ve sitotoksik T lenfositle ilişkili antijen gibi imza Treg yüzey moleküllerini eksprese eden bir hücre alt kümesinin, Foxp3 ekspresyonunu kaybedebileceğini ve aktifleştirilmiş bir T hafızası alabileceğini göstermiştir. inflamatuar koşullar altında hücre fenotipi, ancak Foxp3'ü yukarı regüle etme ve bir Treg fenotipini yeniden kazanma yeteneğini de koruyabilir ( Komatsu ve ark. 2009 ,Zhou et al. 2009 ). ASD'deki Treg'lerin plastisitesinin ve ASD'deki bu hücre popülasyonlarındaki değişimlere hangi faktörlerin katkıda bulunduğunun daha iyi anlaşılması daha fazla araştırılmalıdır.

                Bu çalışma esas olarak ASD GI alt grubundaki farklılıkları karakterize etmeye odaklanmış olsa da, ASD NoGI grubundaki çocukların LPS ile TLR-4 stimülasyonundan sonra artan IL-1α, IL-1β ve TNFa seviyeleri sergilediklerini bulduk . Periferik bağışıklık hücrelerinin uyarılmış tepkilerini inceleyen diğer çalışmalar, aynı zamanda, TNFa, IL-1p ve IL-6 gibi doğuştan gelen sitokin üretiminin arttığına dair bulgular bildirmiştir ( Jyonouchi ve diğerleri. 2001 , Jyonouchi ve diğerleri. 2002 , Enstrom ve diğerleri. 2010). , Jyonouchi ve diğerleri 2014). 2 ila 5 yaş arası daha genç bir çocuk kohortunu kullanan önceki bir çalışmada, ASD'li çocuklardan izole edilmiş kan monositlerinin TLR-4 stimülasyonundan sonra sitokin üretiminin, özellikle IL-1β'nın arttığını bulduk ( Enstrom ve ark. 2010 ). Bu güncel çalışma aynı zamanda ASD NoGI'li çocuklarda doğuştan gelen tepkilerin arttığına işaret etmektedir ve ayrıca artan bağışıklık tepkilerinin zamanla devam ettiği fikrine destek verebilir.

                NOD genlerindeki fonksiyon mutasyonlarının kaybı, şiddetli GI inflamasyonu ile karakterize bir GI hastalığı olan Crohn hastalığına karşı artan duyarlılıkla ilişkilendirilmiştir ( Eckmann ve Karin 2005 ). Başkalarının çalışmasına benzer şekilde hücre içi NOD reseptörleri, NOD1 ve NOD2 aracılığıyla sinyal vererek doğuştan gelen bir bağışıklık tepkisini uyarmak için PGN kullandık ( McDonald et al. 2005 , Sorbara ve Philpott 2011 ). TD NoGI çocukları ile karşılaştırıldığında , ASD NoGI grubunda sitokin yanıtlarında azalma kaydedildi . Paneth hücreleri de dahil olmak üzere özel epitel hücrelerinde NOD2 aktivasyonu, mikrobiyotayı şekillendirebilen defensinler gibi antimikrobiyal moleküllerin üretiminin artmasına neden olur ( Eckmann ve Karin 2005).). Bu tür bir aktivasyon aynı zamanda anti-inflamatuar sitokin IL-10 dahil olmak üzere sitokin üretimine de yol açar, bu da inflamasyona yol açabilen bir azalmadır ( Netea ve diğerleri 2004 ). İlginç bir şekilde, OSB'li çocuklarda PBMC'yi inceleyen bir çalışma, belirgin davranış dalgalanmaları ve GI semptomları olan kişilerin, belirli bağışıklık uyaranlarına karşı bağışıklık tepkilerini azaltarak onları enfeksiyona karşı daha savunmasız hale getirdiğini bulmuştur ( Jyonouchi ve ark. 2011 ). Çalışmamız, yukarıda bahsedildiği gibi belirli sinyal yollarıyla ilgili olabilecek ASD'deki bağlama bağlı uyarımı vurgulamaktadır. Farklı ASD alt gruplarında gözlenen bir dizi bağışıklık uyaranına verilen bu tür farklı tepkilerin nedenleri üzerine daha fazla araştırma yapılması garanti edilir.

                Mikrobiyomun analizinden, veri setimizde üç farklı kümeyi tanımlayabildik; GI semptomları olan örneklerin baskınlığını gösteren bir küme ve yalnızca OSB deneklerinden oluşan iki alt grup içeren başka bir küme. Diğer çalışmaların bulduklarına benzer şekilde ( Wang ve diğerleri 2014 , Rosenfeld 2015 , Son ve diğerleri 2015 ), verilerimiz GI semptomlarından bağımsız olarak OSB'li çocukların mikrobiyom bileşiminde TD gruplarıyla karşılaştırıldığında farklılıklar gösterdi. TD GI ile karşılaştırıldığında ASD GI grubunda, göreli bolluk analizleri birkaç bakteri familyası için farklıydı (yani artan Bacteriodaceae, Lachnospiraceae, Ruminococcaceae ve Prevocellaceae). Ancak, sınırlı örneklem büyüklüğü ve TD GI grubunun daha genç yaşı nedeniyle bu verilere temkinli yaklaşılmalıdır . İlginç bir şekilde, ASD NoGI ve TD NoGI arasında aynı farklılıkları tespit etmedik.bireyler. Ayrıca, Cohen Friendly analizi, mikrobiyomla ilgili bazı biyolojik yolların gruplar arasında farklı şekilde temsil edildiğini gösterdi. Yol analizindeki farklılıklar, hem özellik koşullarında (yani ASD veya TD) hem de durum koşullarında (yani, GI semptomları olan veya olmayan) meydana geldi; bu, yolak süreçlerindeki değişikliklerin aynı zamanda ASD'nin varlığıyla da ilişkili olduğunu ve sadece disbiyoz ile ilgili olduğunu düşündürdü. GI yolu. Bu farklı yollar, mTOR ( Takei ve Nawa 2014 ), Erk1/2 ( Pinto ve ark. 2014 ) ve nörogelişim için önemli büyüme faktörleri ( Sadakata ve Furuichi 2009 ) gibi ASD ile ilişkili diğer bazı sinyal yollarında bildirilen değişikliklerle de etkileşime girebilir . ).

                Laktuloz:mannitol testine dayanarak, ASD'de artan GI geçirgenliği gösterilmiştir ve bazı çocuklarda mikrobiyota ve bağışıklık sisteminin etkileşime girdiği başka bir mekanizma olabilir. Bağırsak geçirgenliğini düzenleyen bir molekül olan Zonulin, haptoglobin 2'nin (Hp2 öncesi) öncüsüdür ( Tripathi ve ark. 2009 ). HP1 ve HP2 olarak adlandırılan ve sonuncusu insan türüne özgü olan iki ortak baskın alel varyantı, genel popülasyonda çeşitli şekillerde dağılır ve HP1-1 (~%20), HP2-1 (~%50) olmak üzere üç genotip ile sonuçlanır. ve HP2-2 (~%30) ( Melamed-Frank ve ark. 2001). Polimorfik olmayan bir β zinciri ile takip eden a1/a2 varyantlarının yapısal düzenlemeleri, önemli fonksiyonel ve biyolojik çıkarımlar taşıyan üç fenotip boyunca önemli ölçüde farklılık gösterir ( Papp ve diğerleri , 2008 , Polticelli ve diğerleri. 2008 ). Birkaç çalışma, HP2 alelinin varlığının, bağışıklık aracılı hastalıkları geliştirme riski ile ilişkili olduğunu ( Blum ve ark. 2008 , Papp ve ark. 2008 ) ve HP2 homozigozunun kötü prognoz ile ilişkili olduğunu ( Delanghe ve ark. 1998 , Kasvosve) öne sürmüştür. ve ark. 2000 ) ve uzun ömürlülüğün azalması ( Napolioni ve ark. 2011)). Tüm ASD hastalarında HP2 gen ürününün aşırı temsili için anlamlı olmayan bir eğilim ve ASD GI ile TD GI arasında anlamlı bir fark gözlemledik . Ön-Hp-2 olarak zonulin tanımlanması sayesinde öne edilebilir varlığı HP2geni (heterozigoz veya homozigozda) bağırsak geçirgenliğini artırmaya yatkınlığa yol açabilir. Bağırsak bariyeri fonksiyonunun kaybı, patojenik bakterilerin ve/veya bileşenlerinin (endotoksinler dahil) yanı sıra gıda kaynaklı peptitlerin bağırsak mukozasına girmesini ve nihayetinde bağışıklık hücreleri ile müteakip artan etkileşimlere yol açan kan akışını kolaylaştırabilir. Bazı ASD çocuklarında, gram negatif bakterilerin hücre duvarlarının bir yan ürünü olan LPS'nin artan kan seviyeleri bulunmuştur; artan IL-6 üretimi ile ilişkili bir bulgu ( Emanuele ve ark. 2010 ). Ek olarak, HP geni IL-6 düzenlemesi altındadır ( Oliviero ve Cortese 1989 ) ve bu nedenle ASD GI'de artan IL-6çocuklar, en az bir kopyası olan hastalarda zonulin ( HP2 ) geninin aşırı ekspresyonuna yol açabilir . Bağırsakta lokal bir bağışıklık tepkisi, ASD'de bağırsak bakteri ürünlerinin geçişinin artmasına yol açabilen bağırsak bariyerinin bozulmasına katkıda bulunabilir. IL-6 gibi sitokinlerin nöronal fonksiyonu değiştirdiği bilinmektedir ve OSB'de artan davranış bozukluğu ile ilişkilendirilmiştir ( Onore ve ark. 2012 ). Bu nedenle, bağırsak bakterileri, bağırsakta vagal duyu sinir liflerini uyarabilen mukozal ve periferik bağışıklık sistemi yoluyla CNS ile dolaylı olarak iletişim kurabilir ( Goehler ve diğerleri, 2000 ).

                Kommensal ve patojenik mikroplar, Kısa zincirli yağ asitlerinin (SCFA) salınımı yoluyla bağırsağı etkileyebilir ( MacFabe, 2015 ). SCFA, metabolizmayı ve mitokondri işlevini etkileyerek, sinyal molekülleri olarak hareket ederek, GI motilitesini azaltarak ve bağışıklık hücrelerini modüle ederek bağırsakları ve diğer organları etkiler ( Vinolo ve diğerleri 2011 , den Besten ve diğerleri 2013 , MacFabe 2015 ). Bağırsakta üretilen en yaygın SCFA, propiyonik asit (PPA), butirik asit ve asetik asittir ( MacFabe 2015 ). OSB'de GI semptomları ve metabolik bozukluklar sıklıkla birlikte görülür ( Frye ve ark. 2013 , Frye ve ark. 2015 , Rose ve ark. 2017). SCFA'nın sağlık üzerinde faydalı etkileri/etkileri olduğu gösterilmiş olsa da, konsantrasyon ve konakçı faktörlerin bir rol oynadığı görülmektedir. Örneğin, bir çalışma, lenfoblastik hücre hatlarında PPA maruziyetinin ATP bağlantılı solunumu, rezerv kapasitesini ve maksimum solunumu arttırdığını bulmuştur; enerji üretimi için önemli olan faktörler ve hücrelerin metabolik stres faktörlerine uyum sağlama yeteneği. Bununla birlikte, artan PPA konsantrasyonları ayrıca proton sızıntısını ve mitokondriyi olumsuz etkileyen reaktif oksijen türlerini (ROS) arttırdı. Bu nedenle, belirli konsantrasyonlarda PPA hücre için faydalı olabilir, ancak yüksek konsantrasyonlarda olumsuz bir etki olabilir ( Frye ve ark. 2016).). OSB'li çocuklar ATP'ye bağlı solunum, rezerv kapasitesi ve maksimum solunumda artışlarla PPA'ya daha güçlü bir yanıt gösterdiğinden konakçı faktörleri de katkıda bulunur, ancak oksidatif koşullar altında proton sızıntısı solunumu arttığından PPA'nın yararlı etkileri kayboldu. yedek kapasitede bir azalma ( Frye ve ark. 2016 ). Aynı gruptan yapılan bir takip çalışması, atipik mitokondriyal tepkiler sergileyen OSB'li çocukların lenfoblastik hücrelerine PPA maruziyetinin, immünoglobulin üretiminden ve T hücrelerinin düzenlenmesinden sorumlu genler de dahil olmak üzere immün aktivasyonla ilişkili genlerin yukarı regülasyonu ile sonuçlandığını buldu ( Frye ve ark. 2017). GI, bağışıklık ve metabolik işlev arasındaki etkileşim, büyük kohort çalışmalarında daha fazla analiz yapılmasını garanti eder. Çalışma bulgularımızdan heyecan duysak da, birkaç sınırlamaya dikkat etmenin önemli olduğunu düşünüyoruz. Çalışmamız, çalışma popülasyonumuzu nasıl katmanlaştırabileceğimizi etkileyen küçük örneklem boyutlarıyla sınırlıdır. Diğer çalışmalarda olduğu gibi, genel popülasyondaki düşük sıklıkları nedeniyle GI sorunları yaşayan tipik olarak gelişen çocukları işe almak zordu. Sınırlı sayıda olması nedeniyle, belirli semptom kümeleri (örn. kabızlığa karşı ishal ve IBS) veya mikrobiyal bileşim, vb. arasındaki farklılıkları karşılaştırmak için grupları daha fazla parçalayamadık. OSB'nin cinsiyet oranı, grup başına düşük kadın sayısı nedeniyle cinsiyet farklılıklarını analiz etmek için yeterli istatistiksel güce sahip değildik. Son olarak, çalışmamız 3 yaşından 12 yaşına kadar geniş bir yaş grubunu içeriyordu ve daha büyük örneklem büyüklükleri ile verileri yaşlar arasında karşılaştırmak mümkün olabilirdi. Bu sınırlamalara rağmen, bu çalışmanın OSB ve GI semptomları olan çocuklar için değerli bilgiler sağladığını düşünüyoruz.

                Git: 5. Sonuçlar


                GI semptomları gösteren OSB'li çocukları, göstermeyenlerle karşılaştırırken birkaç farklılık bulduk. Bunların en dikkate değer olanı, uyarımı takiben ASD GI gruplarının azaltılmış düzenleyici TGFβ1 yanıtıydı . Ayrıca ASD GI semptomları olan çocuklarda, ASD NoGI'li çocuklara kıyasla TLR-4 stimülasyonundan sonra mukozal inflamasyona bağlı sitokin üretiminde bir artış kaydettik . Mikrobiyom analizimiz, GI semptomlarının varlığı ile konakçı mikroflorası arasındaki ilişkinin altını çizer ve OSB'de GI sorunlarının komorbiditesinde dysbiosis'in olası bir rolünü öne sürer.

                ​ Öne Çıkanlar
                • OSB ve GI semptomları olan çocuklar, GI olmayan OSB'ye veya sağlıklı, tipik olarak gelişen çocuklara kıyasla daha düşük düzenleyici immün sitokin seviyelerine sahiptir.
                • ASD ve GI komorbiditeleri olan çocuklarda, GI olmayan OSB'ye kıyasla artmış mukoza ile ilişkili inflamatuar sitokinler de bulundu.
                • ASD GI , HP2 genini kodlayan zonulin'in aşırı temsiline ve IL-6'nın aşırı ekspresyonuna yönelik bir eğilime sahipti, bu da onları artan bağırsak geçirgenliği için daha yüksek risk altında yapıyor
                • ASD GI'nin mikrobiyota bileşimi , diğer üç gruptan farklıydı ve muhtemelen ASD patogenezinde ve kronik bağırsak iltihabında yer alan değiştirilmiş yolaklarla mekanik olarak bağlantılıydı.


                Git: Ek materyal

                1


                Ek Tablo 1 : ASD ve TD çocuklarında Hp genotiplerinin dağılımı. (% parantez içinde gösterilmiştir)
                Görmek için buraya tıkla. (14K, belge)2


                Ek Şekil 1 : Tüm çalışmaya katılanlara sorulan GI Anketi sorularını gösteren akış şeması. Sorular, eğitimli personel tarafından sorulur ve kaydedilir. Katılımcılardan belirli bir tarih sorulan sorular dışında tüm sorulara evet, hayır veya bilmiyorum şeklinde yanıt vermeleri istenmiştir. Anket kabızlık bölümüyle başladı, ardından ishal bölümü ve ardından IBS. Katılımcılar, daha önceki bir bölümün kriterlerini karşılamış olsalar bile, tüm bölümler için soruları yanıtladılar. Yalnızca bir katılımcı birden fazla kategori için kriterleri karşıladı, OSB'li bir kişi hem kabızlık hem de İshal için nitelikli. Katılımcılar, belirli kategori kriterlerini karşılamak için en az 6 aydır semptomlar yaşıyor olmalıdır.
                Görmek için buraya tıkla. (2,5M, tif)3


                Ek Şekil 2 : GI semptomları olmayan (TD NOGI ) ve tipik olarak GI semptomları ile gelişen (TD GI ) tipik olarak gelişen çocuklar arasındaki farklılıkları gösteren ısı haritası . Kırmızı, TD NOGI'ye kıyasla TD GI grubunda sitokin üretiminde önemli bir artışı (p < 0.05) gösterir ; mavi, TD NOGI ile karşılaştırıldığında TD GI grubunda sitokin üretiminde önemli (p < 0.05) bir düşüşü gösterir . Medyan olarak sunulan veriler.
                Görmek için buraya tıkla. (436K, tif)4


                Ek Şekil 3 : 16s veri kümesindeki doğru küme sayısını tahmin etmek için boşluk istatistik analizi kullanıldı.
                Görmek için buraya tıkla. (1.6M, tif)5


                Ek Şekil 4 : Farklı denek gruplarında yol temsillerini temsil eden Cohen Dostu ilişkilendirme grafiği. Her dikdörtgenin yüksekliği, gözlemlenen ve beklenen sayıların normalleştirilmiş farklılıklarıyla orantılıdır, taban çizgisinden sapmanın derecesini belirtir ve genişlik, beklenen sayıların kareköküyle orantılıdır. Siyah dikdörtgen, gözlemlenen frekansın beklenenden daha yüksek olduğunu, dolayısıyla kategoride bir zenginleşme olduğunu gösterirken, kırmızı dikdörtgenler o kategorideki tükenmeyi gösterir.
                Görmek için buraya tıkla. (321K, tiff)
                Git: Teşekkür


                Çalışmaya katılımları için katılımcılara ve ailelerine ve teknik destekleri için California Üniversitesi Davis MIND Enstitüsü ve CHARGE projesinin personeline teşekkür ederiz. Bu çalışma Autism Speaks Foundation (Hibe #7567) tarafından finanse edilmiştir, NIH hibeleri #R21HD086669, R21ES025560, R01ES015359, P30ES23513, U54HD079125, UL1TR001860, R01DK048373 ve P01ES011269; Jane Botsford Johnson Vakfı, Jonty Vakfı ve Peter Emch Vakfı.

                Git: Dipnotlar


                Yayıncının Sorumluluk Reddi: Bu, yayına kabul edilmiş, düzenlenmemiş bir makalenin PDF dosyasıdır. Müşterilerimize bir hizmet olarak, el yazmasının bu erken versiyonunu sunuyoruz. Makale, alıntı yapılabilir son haliyle yayınlanmadan önce, kopya düzenleme, dizgi ve ortaya çıkan kanıtın gözden geçirilmesinden geçecektir. Lütfen üretim sürecinde içeriği etkileyebilecek hataların keşfedilebileceğini ve dergi için geçerli olan tüm yasal uyarıların geçerli olduğunu unutmayın.


                Git: Referanslar
                • Abrahams BS, Geschwind DH. Otizm genetiğindeki gelişmeler: yeni bir nörobiyolojinin eşiğinde. Nat Rev Genet. 2008; 9 (5):341–355. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Ahmad SF, Zoheir KM, Ansari MA, Nadeem A, Bakheet SA, Al-Ayadhi LY, Alzahrani MZ, Al-Shabanah OA, Al-Harbi MM, Attia SM. Otizmli çocuklarda Th1, Th2, Th17 ve T düzenleyici hücre ile ilgili transkripsiyon faktörü sinyallemesinin düzensizliği.Mol Neurobiol 2016 [ PubMed ] [ Google Akademik ]
                • Ander BP, Barger N, Stamova B, Sharp FR, Schumann CM. Otizm spektrum bozukluklarında bağışıklık, hücre döngüsü ve diğer yolların düzensizliği ile ilişkili temporal kortekste atipik miRNA ekspresyonu. Mol Otizm. 2015; 6 : 37. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Arumugam M, Raes J, Pelletier E, Le Paslier D, Yamada T, Mende DR, Fernandes GR, Tap J, Bruls T, Batto JM, Bertalan M, Borruel N, Casellas F, Fernandez L, Gautier L, Hansen T, Hattori M, Hayashi T, Kleerebezem M, Kurokawa K, Leclerc M, Levenez F, Manichanh C, Nielsen HB, Nielsen T, Pons N, Poulain J, Qin J, Sicheritz-Ponten T, Tims S, Torrents D, Ugarte E, Zoetendal EG, Wang J, Guarner F, Pedersen O, de Vos WM, Brunak S, Dore J, Weissenbach J, Ehrlich SD, Bork P. İnsan bağırsak mikrobiyomunun enterotipleri. Doğa. 2011; 473 (7346)::174–180. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Ashwood P, Anthony A, Pellicer AA, Torrente F, Walker-Smith JA, Wakefield AJ. Gerileyen otizmli çocuklarda bağırsak lenfosit popülasyonları: geniş mukozal immünopatoloji kanıtı. J Clin İmmünol. 2003; 23 (6):504–517. [ PubMed ] [ Google Akademik ]
                • Ashwood P, Anthony A, Torrente F, Wakefield AJ. Otizmli ve gastrointestinal semptomları olan çocuklarda spontan mukozal lenfosit sitokin profilleri: mukozal immün aktivasyon ve azaltılmış karşı düzenleyici interlökin-10. J Clin İmmünol. 2004; 24 (6):664–673. [ PubMed ] [ Google Akademik ]
                • Ashwood P, Enstrom A, Krakowiak P, Hertz-Picciotto I, Hansen RL, Croen LA, Ozonoff S, Pessah IN, Van de Water J. Otizmde azaltılmış dönüştürücü büyüme faktörü beta1: immün düzensizlik ve klinik davranış bozukluğu arasında potansiyel bir bağlantı sonuçlar. J Nöroimmünol. 2008; 204 (1-2):149–153. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Asperger H. Çölyak hastalığı olan çocukların psikopatolojisi. Anne Pediatr. 1961; 197 :346–351. [ PubMed ] [ Google Akademik ]
                • Ballard J, Crane DR, Harper JM, Fawcett D, Sandberg J. Otizm spektrum bozukluklarında ruh sağlığı hizmeti kullanımı. Otizm Spektrum Bozukluklarında Araştırma.2016; 23 :84-93. [ Google Akademik ]
                • Bauman ML. Otizmde tıbbi komorbiditeler: tanı ve tedavideki zorluklar. Nöroterapötikler. 2010; 7 (3):320–327. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Blum S, Milman U, Shapira C, Levy AP. Diyabetik kardiyovasküler hastalığın önlenmesinde haptoglobin genotipinin farmakogenomik uygulaması. Farmakogenomik. 2008; 9 (8):989-991. [ PubMed ] [ Google Akademik ]
                • Buie T, Campbell DB, Fuchs GJ, 3rd, Furuta GT, Levy J, Vandewater J, Whitaker AH, Atkins D, Bauman ML, Beaudet AL, Carr EG, Gershon MD, Hyman SL, Jirapinyo P, Jyonouchi H, Kooros K, Kushak R, Levitt P, Levy SE, Lewis JD, Murray KF, Natowicz MR, Sabra A, Wershil BK, Weston SC, Zeltzer L, Winter H. ASD'li bireylerde gastrointestinal bozuklukların değerlendirilmesi, teşhisi ve tedavisi: bir fikir birliği raporu . Pediatri. 2010; 125 (Ek 1):S1–18. [ PubMed ] [ Google Akademik ]
                • Büşra KO. Çölyak hastalığının nörolojik sunumu. Gastroenteroloji. 2005; 128 (4 Ek 1):S92–97. [ PubMed ] [ Google Akademik ]
                • Caporaso JG, Kuczynski J, Stombaugh J, Bittinger K, Bushman FD, Costello EK, Fierer N, Pena AG, Goodrich JK, Gordon JI, Huttley GA, Kelley ST, Knights D, Koenig JE, Ley RE, Lozupone CA, McDonald D , Muegge BD, Pirrung M, Reeder J, Sevinsky JR, Turnbaugh PJ, Walters WA, Widmann J, Yatsunenko T, Zaneveld J, Knight R. QIIME, yüksek verimli topluluk sıralama verilerinin analizine izin verir. Nat Yöntemleri. 2010; 7 (5):335–336. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Chaidez V, Hansen RL, Hertz-Picciotto I. Otizmli çocuklarda gastrointestinal problemler, gelişimsel gecikmeler veya tipik gelişim. J Otizm Dev Bozukluğu. 2014; 44 (5):1117-1127. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Choi GB, Yim YS, Wong H, Kim S, Kim H, Kim SV, Hoeffer CA, Littman DR, Huh JR. Farelerdeki maternal interlökin-17a yolu, yavrularda otizm benzeri fenotipleri teşvik eder. Science 2016 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Cohen A. İki yönlü bir beklenmedik durum tablosundaki önemli bileşenlerin grafiksel gösteriminde. İstatistikte İletişim—Teori ve Yöntemler. 1980; A9 :1025-1041. [ Google Akademik ]
                • Coombes JL, Powrie F. Bağırsak bağışıklık düzenlemesinde Dendritik hücreler. Nat Rev İmmünol. 2008; 8 (6):435–446. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Coury DL, Ashwood P, Fasano A, Fuchs G, Geraghty M, Kaul A, Mawe G, Patterson P, Jones NE. Otizm spektrum bozukluğu olan çocuklarda gastrointestinal koşullar: bir araştırma gündemi geliştirmek. Pediatri. 2012; 130 (Ek 2):S160–168. [ PubMed ] [ Google Akademik ]
                • D'Eufemia P, Celli M, Finocchiaro R, Pacifico L, Viozzi L, Zaccagnini M, Cardi E, Giardini O. Otizmli çocuklarda anormal bağırsak geçirgenliği. Acta Pediatr. 1996; 85 (9):1076–1079. [ PubMed ] [ Google Akademik ]
                • de Magistris L, Familiari V, Pascotto A, Sapone A, Frolli A, Iardino P, Carteni M, Rosa M De, Francavilla R, Riegler G, Militerni R, Bravaccio C. Otizm spektrum bozukluğu olan hastalarda bağırsak bariyeri değişiklikleri ve birinci derece akrabalarında. J Pediatr Gastroenterol Nutr. 2010; 51 (4):418–424. [ PubMed ] [ Google Akademik ]
                • Delanghe JR, Langlois MR, Boelaert JR, Van Acker J, Van Wanzeele F, van der Groen G, Hemmer R, Verhofstede C, De Buyzere M, De Bacquer D, Arendt V, Plum J. Haptoglobin polimorfizmi, demir metabolizması ve ölüm oranı HIV enfeksiyonu. AIDS. 1998; 12 (9):1027-1032. [ PubMed ] [ Google Akademik ]
                • den Besten G, van Eunen K, Groen AK, Venema K, Reijngoud DJ, Bakker BM. Diyet, bağırsak mikrobiyotası ve konakçı enerji metabolizması arasındaki etkileşimde kısa zincirli yağ asitlerinin rolü. J Lipid Res. 2013; 54 (9):2325–2340. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • DePaolo RW, Abadie V, Tang F, Fehlner-Peach H, Hall JA, Wang W, Marietta EV, Kasarda DD, Waldmann TA, Murray JA, Semrad C, Kupfer SS, Belkaid Y, Guandalini S, Jabri B. Yardımcı adjuvan retinoik asit ve IL-15'in etkileri, diyet antijenlerine karşı inflamatuar bağışıklığı indükler. Doğa. 2011; 471 (7337):220–224. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Desbonnet L, Clarke G, Shanahan F, Dinan TG, Cryan JF. Mikrobiyota, faredeki sosyal gelişim için gereklidir. Mol Psikiyatri. 2014; 19 (2):146–148. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Eckmann L, Karin M. NOD2 ve Crohn hastalığı: fonksiyon kaybı mı yoksa kazanç mı? bağışıklık. 2005; 22 (6):661–667. [ PubMed ] [ Google Akademik ]
                • Edgar RC. Büyüklük siparişlerini BLAST'tan daha hızlı arayın ve kümeleyin. Biyoinformatik. 2010; 26 (19):2460–2461. [ PubMed ] [ Google Akademik ]
                • Edgar RC, Haas BJ, Clemente JC, Quince C, Knight R. UCHIME, kimera algılamanın hassasiyetini ve hızını artırır. Biyoinformatik. 2011; 27 (16):2194–2200. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Elinav E, Strowig T, Kau Andrew L, Henao-Mejia J, Thaiss Christoph A, Booth Carmen J, Peaper David R, Bertin J, Eisenbarth Stephanie C, Gordon Jeffrey I, Flavell Richard A. NLRP6 Inflammasome Regulates Colonic Microbial Ecology and Risk Kolit için. Hücre. 2011; 145 (5):745–757. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Emanuele E, Orsi P, Boso M, Broglia D, Brondino N, Barale F, di Nemi SU, Politi P. Şiddetli otizmli hastalarda düşük dereceli endotoksemi. Neurosci Lett. 2010; 471 (3):162–165. [ PubMed ] [ Google Akademik ]
                • Enstrom AM, Onore CE, Van de Water JA, Ashwood P. Otizm spektrum bozukluğu olan çocuklarda TLR ligandlarına farklı monosit tepkileri. Beyin Davranışı Bağışıklığı. 2010; 24 (1):64–71. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Fadrosh D, Ma B, Gajer P, Sengamalay N, Ott S, Brotman RM, Ravel J. İncelenmekte olan Illumina MiSeq Platformunda Multiplexed 16S rRNA Gen Sequencing için Geliştirilmiş Çift İndeksleme Yaklaşımı . [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Fadrosh DW, Ma B, Gajer P, Sengamalay N, Ott S, Brotman RM, Ravel J. Illumina MiSeq platformunda çoğullanmış 16S rRNA gen dizilimi için geliştirilmiş bir çift indeksleme yaklaşımı. Mikrobiyom. 2014; 2 (1):6. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Fasano A, Catassi C. Çocuklarda Çölyak hastalığı. En İyi Uygulama Res Clin Gastroenterol. 2005; 19 (3):467–478. [ PubMed ] [ Google Akademik ]
                • Finegold SM, Dowd SE, Gontcharova V, Liu C, Henley KE, Wolcott RD, Youn E, Summanen PH, Granpeesheh D, Dixon D, Liu M, Molitoris DR, Green JA., Otistik ve kontrolün fekal mikroflorasının 3. Pyrosequencing çalışması çocuklar. Anaerob. 2010; 16 (4):444-453. [ PubMed ] [ Google Akademik ]
                • Finegold SM, Molitoris D, Song Y, Liu C, Vaisanen ML, Bolte E, McTeague M, Sandler R, Wexler H, Marlowe EM, Collins MD, Lawson PA, Summanen P, Baysallar M, Tomzynski TJ, Read E, Johnson E , Rolfe R, Nasir P, Shah H, Haake DA, Manning P, Kaul A. Geç başlangıçlı otizmde gastrointestinal mikroflora çalışmaları. Klinik Enfeksiyon Dis. 2002; 35 (Ek 1):S6–S16. [ PubMed ] [ Google Akademik ]
                • Dostu M. Kategorik veriler için grafik yöntemler. SAS Kullanıcı Grubu Uluslararası Konferans Bildirileri. 1992; 17 :190–200. [ Google Akademik ]
                • Frye RE, Melnyk S, MacFabe DF. Eşsiz açil-karnitin profilleri, otizm spektrum bozukluğunda edinilmiş mitokondriyal hastalık için potansiyel biyobelirteçlerdir. Çeviri Psikiyatrisi. 2013; 3 (1):e220. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Frye RE, Nankova B, Bhattacharyya S, Rose S, Bennuri SC, MacFabe DF. Otistik ve Nörotipik Lenfoblastoid Hücre Hatlarında İmmünolojik Yolların Enterik Mikrobiyom Metabolit Propiyonik Asit Tarafından Modülasyonu. İmmünolojide Sınırlar. 2017; 8 (1670) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Frye RE, Rose S, Chacko J, Wynne R, Bennuri SC, Slattery JC, Tippett M, Delhey L, Melnyk S, Kahler SG, MacFabe DF. Otizm ve kontrol hücre hatlarında mikrobiyom metaboliti propiyonik asit tarafından mitokondriyal fonksiyonun modülasyonu. Tercüme Psikiyatri. 2016; 6 (10):e927. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Frye RE, Rose S, Slattery J, MacFabe DF. Otizm spektrum bozukluğunda gastrointestinal fonksiyon bozukluğu: mitokondri ve enterik mikrobiyomun rolü. Microb Ecol Sağlık Dis. 2015; 26 :27458. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Furlano RI, Anthony A, Day R, Brown A, McGarvey L, Thomson MA, Davies SE, Berelowitz M, Forbes A, Wakefield AJ, Walker-Smith JA, Murch SH. Otizmli çocuklarda epitel hasarı olan kolonik CD8 ve gama delta T hücre infiltrasyonu. J Pediatr. 2001; 138 (3):366-372. [ PubMed ] [ Google Akademik ]
                • Genuis SJ, Bouchard TP. Otizm olarak ortaya çıkan çölyak hastalığı. J Çocuk Nörol. 2010; 25 (1):114–119. [ PubMed ] [ Google Akademik ]
                • Geschwind DH. Otizm: Birçok Gen, Ortak Yollar? Hücre. 2008; 135 (3):391–395. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Gillberg C, Billstedt E. Otizm ve Asperger sendromu: diğer klinik bozukluklarla birlikte bulunma. Acta Psychiatrica Scandinavica. 2000; 102 (5):321–330. [ PubMed ] [ Google Akademik ]
                • Goehler LE, Gaykema RP, Hansen MK, Anderson K, Maier SF, Watkins LR. Vagal bağışıklıktan beyine iletişim: bir visseral kemosensör yolu. Auton Neurosci. 2000; 85 (1-3):49-59. [ PubMed ] [ Google Akademik ]
                • Hadjivassiliou M, Grunewald RA, Davies-Jones GA. Nörolojik bir hastalık olarak gluten duyarlılığı. J Neurol Neurosurg Psikiyatrisi. 2002; 72 (5):560-563. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Hale-Donze H, Wahl SM, Jackson RJ, McGhee JR. İmmünolojide Güncel Protokoller. John Wiley & Sons, Inc; 2001. Biyolojik Akışkanlarda TGF-β Ölçümü. [ PubMed ] [ Google Akademik ]
                • Hallert C, Derefeldt T. Erişkin Çölyak Hastalığında Psişik Rahatsızlıklar. İskandinav Gastroenteroloji Dergisi. 1982; 17 (1):17–19. [ PubMed ] [ Google Akademik ]
                • Hallmayer J, Cleveland S, Torres A, Phillips J, Cohen B, Torigoe T, Miller J, Fedele A, Collins J, Smith K, Lotspeich L, Croen LA, Ozonoff S, Lajonchere C, Grether JK, Risch N. Genetik kalıtım derecesi ve otizmli ikiz çiftler arasında paylaşılan çevresel faktörler. Arch Gen Psikiyatri. 2011; 68 (11):1095-1102. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Harriman GR, Kunimoto DY, Elliott JF, Paetkau V, Strober W. IgA B hücre farklılaşmasında IL-5'in rolü. J İmmünol. 1988; 140 (9):3033–3039. [ PubMed ] [ Google Akademik ]
                • Harrison OJ, Powrie FM. Bağırsakta düzenleyici T hücreleri ve bağışıklık toleransı. Cold Spring Harb Perspect Biol. 2013; 5 (7) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Hertz-Picciotto I, Croen LA, Hansen R, Jones CR, van de Water J, Pessah IN. CHARGE çalışması: otizme katkıda bulunan genetik ve çevresel faktörlerin epidemiyolojik bir araştırması. Çevre Sağlığı Perspektifi. 2006; 114 (7):1119-1125. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Hirata I, Mohri I, Kato-Nishimura K, Tachibana M, Kuwada A, Kagitani-Shimono K, Ohno Y, Ozono K, Taniike M. Otizm spektrum bozukluğu olan okul öncesi çocuklarda uyku sorunları daha sık görülür ve sorunlu davranışlarla ilişkilidir. Gelişimsel Yetersizlikler Araştırması. 2016; 49–50 :86–99. [ PubMed ] [ Google Akademik ]
                • Hooper LV, Littman DR, Macpherson AJ. Mikrobiyota ve bağışıklık sistemi arasındaki etkileşimler. Bilim. 2012; 336 (6086):1268–1273. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Horvath K, Perman JA. Otizm ve gastrointestinal semptomlar. Curr Gastroenterol Temsilcisi 2002; 4 (3):251–258. [ PubMed ] [ Google Akademik ]
                • Huang F, Long Z, Chen Z, Li J, Hu Z, Qiu R, Zhuang W, Tang B, Xia K, Jiang H. Çin'de MiRNA İfadesine Dayalı Otizm Spektrum Bozukluğu ile İlişkili Gen Düzenleyici Ağların İncelenmesi. PLoS Bir. 2015; 10 (6):e0129052. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Huppler AR, Conti HR, Hernandez-Santos N, Darville T, Biswas PS, Gaffen SL. Nötrofillerin IL-17'ye bağlı mukozal kandidiyaza karşı bağışıklıktaki rolü. J İmmünol. 2014; 192 (4):1745-1752. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Iwakura Y, Ishigame H. Enflamasyonda IL-23/IL-17 ekseni. Klinik Araştırma Dergisi. 2006; 116 (5):1218–1222. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Jiang W, Wang X, Zeng B, Liu L, Tardivel A, Wei H, Han J, MacDonald HR, Tschopp J, Tian Z, Zhou R. Bağırsak mikrobiyotasının NOD2 tarafından tanınması, bağırsak içi epitelyal lenfositlerin homeostazı için esastır. J Exp Med. 2013; 210 (11):2465–2476. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Jyonouchi H, Geng L, Davidow AL. Periferik kan monositlerinin sitokin profilleri, ASD deneklerinin bir alt kümesinde bağışıklık hakaretlerini takiben davranışsal semptomlardaki değişikliklerle ilişkilidir: inflamatuar bir alt tip mi? Nöroinflamasyon Dergisi. 2014; 11 :187. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Jyonouchi H, Geng L, Streck DL, Toruner GA. Kronik gastrointestinal (GI) semptomlar ve belirgin davranışsal semptomlar gösteren otizm spektrum bozukluğu (ASD) olan çocuklar, belirgin doğuştan gelen bağışıklık anormallikleri ve periferik kan (PB) monositlerinin transkripsiyonel profilleri sergiler. J Nöroimmünol. 2011; 238 (1-2):73-80. [ PubMed ] [ Google Akademik ]
                • Jyonouchi H, Sun S, Itokazu N. Otizm spektrum bozukluğu olan hastalarda yaygın diyet proteinlerine karşı inflamatuar yanıtlar ve sitokin üretimi ile ilişkili doğuştan gelen bağışıklık. Nöropsikobiyoloji. 2002; 46 (2):76-84. [ PubMed ] [ Google Akademik ]
                • Jyonouchi H, Sun S, Le H. Otizm spektrum bozuklukları ve gelişimsel gerileme olan çocuklarda doğuştan gelen ve adaptif bağışıklık tepkileri ile ilişkili proinflamatuar ve düzenleyici sitokin üretimi. J Nöroimmünol. 2001; 120 (1-2):170–179. [ PubMed ] [ Google Akademik ]
                • Kang DW, Park JG, Ilhan ZE, Wallstrom G, Labaer J, Adams JB, Krajmalnik-Brown R. Otistik çocukların bağırsak mikroflorasında Prevotella ve diğer fermenterlerin insidansında azalma. PLoS Bir. 2013; 8 (7):e68322. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Kanner L. Duygulanımsal temasın otistik bozuklukları. Sinir Çocuk. 1943; 2 : 33. [ Google Akademik ]
                • Kasvosve I, Gomo ZA, Mvundura E, Moyo VM, Saungweme T, Khumalo H, Gordeuk VR, Boelaert JR, Delanghe JR, De Bacquer D, Gangaidzo IT. Tüberkülozlu hastalarda haptoglobin polimorfizmi ve mortalite. Int J Tuberc Akciğer Dis. 2000; 4 (8):771–775. [ PubMed ] [ Google Akademik ]
                • Komatsu N, Mariotti-Ferrandiz ME, Wang Y, Malissen B, Waldmann H, Hori S. Doğal Foxp3+ T hücrelerinin heterojenliği: kararlı bir düzenleyici T hücre soyu ve plastisiteyi koruyan taahhüt edilmemiş küçük bir popülasyon. Proc Natl Acad Sci ABD A. 2009; 106 (6):1903–1908. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Korn T, Bettelli E, Oukka M, Kuchroo VK. IL-17 ve Th17 Hücreleri. Annu Rev İmmünol. 2009; 27 :485–517. [ PubMed ] [ Google Akademik ]
                • Krieglstein K, Zheng F, Unsicker K, Alzheimer C. Koruyucu olmaktan daha fazlası: merkezi sinapslarda TGF-β/aktivin sinyal yollarının işlevsel rolleri. Nörobilimlerdeki Eğilimler. 2011; 34 (8):421–429. [ PubMed ] [ Google Akademik ]
                • Lahdenpera AI, Holtta V, Ruohtula T, Salo HM, Orivuori L, Westerholm-Ormio M, Savilahti E, Falth-Magnusson K, Hogberg L, Ludvigsson J, Vaarala O. Tedavi edilmemiş çölyak hastalığında ince bağırsak interlökin-17 bağışıklığının yukarı regülasyonu ancak potansiyel çölyak hastalığında veya tip 1 diyabette değil. Clin Exp İmmünol. 2012; 167 (2):226–234. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Landrigan PJ. Otizme ne sebep olur? Çevresel katkıyı keşfetmek. Pediatride Güncel Görüş. 2010; 22 (2):219-225. [ PubMed ] [ Google Akademik ]
                • Langille MG, Zaneveld J, Caporaso JG, McDonald D, Knights D, Reyes JA, Clemente JC, Burkepile DE, Vega Thurber RL, Knight R, Beiko RG, Huttenhower C. 16S rRNA işaretleyici gen dizileri kullanılarak mikrobiyal toplulukların tahmini fonksiyonel profili. Nat Biyoteknoloji. 2013; 31 (9):814-821. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Lee YK, Mazmanian SK. Adaptif Bağışıklık Sisteminin Evriminde Mikrobiyota Kritik Bir Rol Oynadı mı? Bilim. 2010; 330 (6012):1768-1773. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Lochner M, Peduto L, Cherrier M, Sawa S, Langa F, Varona R, Riethmacher D, Si-Tahar M, Di Santo JP, Eberl G. Proinflamatuar IL-17+ ve düzenleyici IL-10+ Foxp3+ RORgamma'nın in vivo dengesi t+ T hücreleri. J Exp Med. 2008; 205 (6):1381–1393. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • MacFabe DF. Enterik kısa zincirli yağ asitleri: metabolizmanın mikrobiyal habercileri, mitokondri ve zihin: otizm spektrum bozukluklarındaki etkileri. Sağlık ve Hastalıkta Mikrobiyal Ekoloji. 2015; 26 doi: 10.3402/mehd.v3426.28177. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                • Magoc T, Salzberg SL. FLASH: genom düzeneklerini iyileştirmek için kısa okumaların hızlı uzunluk ayarı. Biyoinformatik. 2011; 27 (21):2957-2963. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Mannion A, Lider G. Otizm spektrum bozukluğu olan çocuk ve ergenlerde eşlik eden psikolojik bozukluklar, uyku sorunları, gastrointestinal semptomlar ve epilepsi araştırması: İki yıllık bir takip. Otizm Spektrum Bozukluklarında Araştırma. 2016; 22 :20–33. [ Google Akademik ]
                • Mannion A, Lider G, Healy O. Otizm Spektrum Bozukluğu olan çocuk ve ergenlerde eşlik eden psikolojik bozukluklar, uyku sorunları, gastrointestinal semptomlar ve epilepsi üzerine bir araştırma. Otizm Spektrum Bozukluklarında Araştırma. 2013; 7 (1):35–42. [ Google Akademik ]
                • Mantis NJ, Rol N, Corthesy B. Salgı IgA'nın bağırsakta bağışıklık ve mukozal homeostazdaki karmaşık rolleri. Mukozal İmmünol. 2011; 4 (6):603–611. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • McDonald C, Inohara N, Nunez G. Doğuştan gelen bağışıklık ve inflamatuar hastalıkta peptidoglikan sinyali. J Biol Chem. 2005; 280 (21):20177–20180. [ PubMed ] [ Google Akademik ]
                • McDonald D, Price MN, Goodrich J, Nawrocki EP, DeSantis TZ, Probst A, Andersen GL, Knight R, Hugenholtz P. Bakteri ve arkelerin ekolojik ve evrimsel analizleri için açık sıralara sahip gelişmiş bir Greengenes taksonomisi. ISME dergisi. 2012; 6 (3):610–618. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • McMurdie PJ, Holmes S. phyloseq: tekrarlanabilir etkileşimli analiz ve mikrobiyom nüfus sayımı verilerinin grafikleri için bir R paketi. PLoS Bir. 2013; 8 (4):e61217. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Melamed-Frank M, Lache O, Enav BI, Szafranek T, Levy NS, Ricklis RM, Levy AP. Haptoglobinin antioksidan özelliklerinin yapı-fonksiyon analizi. Kan. 2001; 98 (13):3693–3698. [ PubMed ] [ Google Akademik ]
                • Mansiyon JJ, Ben Ahmed M, Begue B, Barbe U, Verkarre V, Asnafi V, Colombel JF, Cugnenc PH, Ruemmele FM, McIntyre E, Brousse N, Cellier C, Cerf-Bensussan N. Interleukin 15: bozulmuş intraepitelyal için bir anahtar Çölyak hastalığında lenfosit homeostazı ve lenfomagenezi. Gastroenteroloji. 2003; 125 (3):730–745. [ PubMed ] [ Google Akademik ]
                • Molloy CA, Manning-Courtney P. Otizmli ve otistik spektrum bozukluğu olan çocuklarda kronik gastrointestinal semptomların prevalansı. Otizm. 2003; 7 (2):165-171. [ PubMed ] [ Google Akademik ]
                • Mundalil Vasu M, Anitha A, Thanseem I, Suzuki K, Yamada K, Takahashi T, Wakuda T, Iwata K, Tsujii M, Sugiyama T, Mori N. Otizmli çocuklarda serum microRNA profilleri. Mol Otizm. 2014; 5 : 40. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Napolioni V, Gianni P, Carpi FM, Concetti F, Lucarini N. Haptoglobin (HP) polimorfizmleri ve insan ömrü: Orta İtalya popülasyonunda kesitsel bir ilişki çalışması. Clin Chim Acta. 2011; 412 (7-8):574–577. [ PubMed ] [ Google Akademik ]
                • Netea MG, Kullberg BJ, de Jong DJ, Franke B, Sprong T, Naber TH, Drenth JP, Van der Meer JW. NOD2, TLR2 ligandları tarafından indüklenen anti-inflamatuar sinyallere aracılık eder: Crohn hastalığı için çıkarımlar. Eur J İmmünol. 2004; 34 (7):2052–2059. [ PubMed ] [ Google Akademik ]
                • Niehus R, Lord C. Otizm spektrum bozukluğu olan çocukların erken tıbbi öyküsü. J Dev Behav Pediatr. 2006; 27 (2 Ek):S120–127. [ PubMed ] [ Google Akademik ]
                • O'Connor W, Jr, Zenevicz LA, Flavell RA. T(H)17 hücrelerinin ikili doğası: odağı işleve kaydırmak. Nat İmmünol. 2010; 11 (6):471–476. [ PubMed ] [ Google Akademik ]
                • Okada K, Hashimoto K, Iwata Y, Nakamura K, Tsujii M, Tsuchiya KJ, Sekine Y, Suda S, Suzuki K, Sugihara G, Matsuzaki H, Sugiyama T, Kawai M, Minabe Y, Takei N, Mori N. Azalan serum otizmli hastalarda dönüştürücü büyüme faktörü-beta1 seviyeleri. Prog Nöropsikofarmakol Biol Psikiyatri. 2007; 31 (1):187–190. [ PubMed ] [ Google Akademik ]
                • Oliviero S, Cortese R. İnsan haptoglobin gen promotörü: interlökin-6'ya duyarlı elementler, interlökin-6 tarafından indüklenen bir DNA bağlayıcı protein ile etkileşime girer. EMBO J. 1989; 8 (4):1145–1151. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Onore C, Careaga M, Ashwood P. Otizmin patofizyolojisinde bağışıklık fonksiyon bozukluğunun rolü. Beyin Davranışı Bağışıklığı. 2012; 26 (3):383-392. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Ostaff MJ, Stange EF, Wehkamp J. Homeostaz ve patolojide antimikrobiyal peptitler ve bağırsak mikrobiyotası. EMBO Moleküler Tıp. 2013; 5 (10):1465-1483. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Papp M, Foldi I, Nemes E, Udvardy M, Harsfalvi J, Altorjay I, Mate I, Dinya T, Varvolgyi C, Barta Z, Veres G, Lakatos PL, Tumpek J, Toth L, Szathmari E, Kapitany A, Gyetvai A , Korponay-Szabo IR. Haptoglobin polimorfizmi: çölyak hastalığı gelişimi ve klinik belirtileri için yeni bir genetik risk faktörü. Klinik Kimya. 2008; 54 (4):697-704. [ PubMed ] [ Google Akademik ]
                • Parracho HM, Bingham MO, Gibson GR, McCartney AL. Otistik spektrum bozukluğu olan çocukların bağırsak mikroflorası ile sağlıklı çocukların bağırsak mikroflorası arasındaki farklar. J Med Mikrobiyol. 2005; 54 (Bölüm 10):987-991. [ PubMed ] [ Google Akademik ]
                • Bolton PF, Bolte S, Bernier R, Baird G, Bailey AJ, Anagnostou E, Almeida J, Wijsman EM, Vieland VJ, Vicente AM, Schellenberg GD, Pericak-Vance M, Paterson AD, Parr JR, Oliveira G, Nürnberger JI, Monaco AP, Maestrini E, Klauck SM, Hakonarson H, Haines JL, Geschwind DH, Freitag CM, Folstein SE, Ennis S, Coon H, Battaglia A, Szatmari P, Sutcliffe JS, Hallmayer J, Gill M, Cook EH, Buxbaum JD , Devlin B, Gallagher L, Betancur C, Scherer SW. Otizm spektrum bozukluklarında düzensiz genlerin ve hücresel yolların yakınsaması. Sutcliffe JS, Hallmayer J, Gill M, Cook EH, Buxbaum JD, Devlin B, Gallagher L, Betancur C, Scherer SW. Otizm spektrum bozukluklarında düzensiz genlerin ve hücresel yolların yakınsaması. Sutcliffe JS, Hallmayer J, Gill M, Cook EH, Buxbaum JD, Devlin B, Gallagher L, Betancur C, Scherer SW. Otizm spektrum bozukluklarında düzensiz genlerin ve hücresel yolların yakınsaması.J Hum Genet'im. 2014; 94 (5):677-694. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Polticelli F, Bocedi A, Minervini G, Ascenzi P. İnsan haptoglobin yapısı ve işlevi – moleküler modelleme çalışması. ŞUBAT J. 2008; 275 (22):5648-5656. [ PubMed ] [ Google Akademik ]
                • Ringel Y, Drossman DA. Crohn hastalığının psikososyal yönleri. Surg Clin Kuzey Am. 2001; 81 (1):231–252, x. [ PubMed ] [ Google Akademik ]
                • Ringel Y, Drossman DA. İrritabl bağırsak sendromu: sınıflandırma ve kavramsallaştırma. J Clin Gastroenterol. 2002; 35 (1 Ek):S7–10. [ PubMed ] [ Google Akademik ]
                • Rose DR, Ashwood P. Otizm İmmünolojisi. İçinde: Fatemi SH, editör. Otizmin Moleküler Temeli. yaylı; New York: 2015. s. 93-115. [ Google Akademik ]
                • Rose S, Bennuri SC, Murray KF, Buie T, Winter H, Frye RE. Otizmli çocukların gastrointestinal mukozasında mitokondriyal disfonksiyon: Kör bir vaka kontrol çalışması. PLoS BİR. 2017; 12 (10):e0186377. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Rosenfeld CS. Mikrobiyom Bozuklukları ve Otizm Spektrum Bozuklukları. İlaç Metab Dispos. 2015; 43 (10):1557–1571. [ PubMed ] [ Google Akademik ]
                • Sadakata T, Furuichi T. Salgı 2 (CAPS2) için gelişimsel olarak düzenlenmiş Ca2+ bağımlı aktivatör proteini BDNF salgılanmasında yer alır ve otizm duyarlılığı ile ilişkilidir. Beyincik. 2009; 8 (3):312-322. [ PubMed ] [ Google Akademik ]
                • Şefik E, Geva-Zatorsky N, Oh S, Konnikova L, Zemmour D, McGuire AM, Burzyn D, Ortiz-Lopez A, Lobera M, Yang J, Ghosh S, Earl A, Snapper SB, Jupp R, Kasper D, Mathis D, Benoist C. Bireysel bağırsak ortakyaşarları, ayrı bir RORγ+ düzenleyici T hücresi popülasyonunu indükler. Bilim. 2015; 349 (6251):993-997. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Son JS, Zheng LJ, Rowehl LM, Tian X, Zhang Y, Zhu W, Litcher-Kelly L, Gadow KD, Gathungu G, Robertson CE, Ir D, Frank DN, Li E. Otizm Spektrumlu Çocuklarda Fekal Mikrobiyota Karşılaştırması Simons Simplex Koleksiyonunda Bozukluklar ve Nörotipik Kardeşler. PLoS Bir. 2015; 10 (10):e0137725. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Song Y, Liu C, Finegold SM. Otistik çocukların dışkısında clostridia'nın gerçek zamanlı PCR ölçümü. Appl Çevre Mikrobiol. 2004; 70 (11):6459-6465. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Sorbara MT, Philpott DJ. Peptidoglikan: Enfeksiyon ve homeostaz sırasında memeli bağışıklık sisteminin kritik bir aktivatörü. İmmünol Rev. 2011; 243 (1):40–60. [ PubMed ] [ Google Akademik ]
                • Spees AM, Wangdi T, Lopez CA, Kingsbury DD, Xavier MN, Winter SE, Tsolis RM, Baumler AJ. Streptomisin kaynaklı inflamasyon, nitrat solunumu yoluyla Escherichia coli bağırsak kolonizasyonunu arttırır. MBio. 2013; 4 (4) [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Stevceva L, Moniuszko M, Ferrari MG. Mukozal Aşı Adjuvanları olarak IL-12, IL-15 ve IL-7'nin kullanılması. Lett Drug Des Discov. 2006; 3 (8):586–592. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Takei N, Nawa H. mTOR sinyali ve normal ve anormal beyin gelişimindeki rolleri. Ön Mol Neurosci. 2014; 7 : 28. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Tomova A, Husarova V, Lakatosova S, Bakos J, Vlkova B, Babinska K, Ostatnikova D. Slovakya'da otizmli çocuklarda gastrointestinal mikrobiyota. Fizyol Davranışı. 2015; 138 :179-187. [ PubMed ] [ Google Akademik ]
                • Torrente F, Anthony A, Heuschkel RB, Thomson MA, Ashwood P, Murch SH. Crohn's ve Helicobacter pylori gastritinden farklı özelliklere sahip regresif otizmde fokal gelişmiş gastrit. J Gastroenterol'um. 2004; 99 (4):598-605. [ PubMed ] [ Google Akademik ]
                • Torrente F, Ashwood P, Day R, Machado N, Furlano RI, Anthony A, Davies SE, Wakefield AJ, Thomson MA, Walker-Smith JA, Murch SH. Regresif otizmli çocuklarda epitelyal IgG ve kompleman birikimi ile ince bağırsak enteropatisi. Mol Psikiyatri. 2002; 7 (4):375-382. 334. [ PubMed ] [ Google Akademik ]
                • Tripathi A, Lammers KM, Goldblum S, Shea-Donohue T, Netzel-Arnett S, Buzza MS, Antalis TM, Vogel SN, Zhao A, Yang S, Arrietta MC, Meddings JB, Fasano A. Identification of human zonulin, a physic prehaptoglobin-2 gibi sıkı bağlantıların modülatörü. Proc Natl Acad Sci ABD A. 2009; 106 (39):16799–16804. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Valicenti-McDermott M, McVicar K, Rapin I, Wershil BK, Cohen H, Shinnar S. Otistik spektrum bozukluğu olan çocuklarda gastrointestinal semptomların sıklığı ve ailede otoimmün hastalık öyküsü ile ilişkisi. J Dev Behav Pediatr. 2006; 27 (2 Ek):S128–136. [ PubMed ] [ Google Akademik ]
                • Vijay-Kumar M, Aitken JD, Carvalho FA, Cullender TC, Mwangi S, Srinivasan S, Sitaraman SV, Knight R, Ley RE, Gewirtz AT. Ücretli Benzeri Reseptöre Sahip Olmayan Farelerde Metabolik Sendrom ve Değişmiş Bağırsak Mikrobiyotası 5. Bilim. 2010; 328 (5975):228–231. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Vinolo MAR, Rodrigues HG, Nachbar RT, Curi R. Kısa Zincirli Yağ Asitleriyle Enflamasyonun Düzenlenmesi. Besinler. 2011; 3 (10):858. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Walker-Smith J, Andrews J. Alfa-1-antitripsin, otizm ve çölyak hastalığı. Lancet. 1972; 2 (7782):883-884. [ PubMed ] [ Google Akademik ]
                • Walker LS, CD A, Rasquin-Weber A. Roma III: Fonksiyonel Gastrointestinal Bozukluklar. McLean, Virginia: Degnon Associates, Inc; 2006. Pediatrik gastrointestinal semptomlar üzerine anket, Roma III versiyonu QPGS-RIII. [ Google Akademik ]
                • Wang L, Christophersen CT, Sorich MJ, Gerber JP, Angley MT, Conlon MA. Sutterella spp'nin artan bolluğu. ve otizm spektrum bozukluğu olan çocukların dışkılarında Ruminococcus torkları. Mol Otizm. 2013; 4 (1):42. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Wang L, Conlon MA, Christophersen CT, Sorich MJ, Angley MT. Otizm spektrum bozukluğu olan çocuklarda gastrointestinal mikrobiyota ve metabolit biyobelirteçleri. Biomark Med. 2014; 8 (3):331–344. [ PubMed ] [ Google Akademik ]
                • Wang Q, Garrity GM, Tiedje JM, Cole JR. Yeni bakteri taksonomisine rRNA dizilerinin hızlı atanması için saf Bayes sınıflandırıcısı. Appl Çevre Mikrobiol. 2007; 73 (16):5261-5267. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Williams BL, Hornig M, Buie T, Bauman ML, Cho Paik M, Wick I, Bennett A, Jabado O, Hirschberg DL, Lipkin WI. Otizmli ve Gastrointestinal Bozuklukları Olan Çocukların Bağırsaklarında Bozulmuş Karbonhidrat Sindirimi ve Taşınması ve Mukozal Disbiyoz. PLoS BİR. 2011; 6 (9):e24585. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Wingate MS. 8 yaşındaki çocuklar arasında otizm spektrum bozukluğunun yaygınlığı - otizm ve gelişimsel engelli izleme ağı, 11 site, Amerika Birleşik Devletleri, 2010. MMWR Surveill Summ. 2014; 63 (2):1–21. [ PubMed ] [ Google Akademik ]
                • Winter SE, Winter MG, Xavier MN, Thiennimitr P, Poon V, Keestra AM, Laughlin RC, Gomez G, Wu J, Lawhon SD, Popova IE, Parikh SJ, Adams LG, Tsolis RM, Stewart VJ, Bäumler AJ. Konaktan Türetilen Nitrat, İltihaplı Bağırsakta E. coli Büyümesini Artırır. Bilim. 2013; 339 (6120):708-711. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                • Xue M, Brimacombe M, Chaaban J, Zimmerman-Bier B, Wagner GC. Otizm spektrum bozuklukları: eşzamanlı klinik bozukluklar. J Çocuk Nörol. 2008; 23 (1):6-13. [ PubMed ] [ Google Akademik ]
                • Zhou X, Bailey-Bucktrout SL, Jeker LT, Penaranda C, Martinez-Llordella M, Ashby M, Nakayama M, Rosenthal W, Bluestone JA. Transkripsiyon faktörü Foxp3'ün kararsızlığı, in vivo patojenik bellek T hücrelerinin üretilmesine yol açar. Nat İmmünol. 2009; 10 (9):1000–1007. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]

                Yorum yap


                • #9
                  Çıplak Farelere İmplante Edilen İnsan Gastrik Ksenograftlarında Helicobacter pylori'nin Yok Edilmesinde Sülforafanın Etkinliği

                  Xavier Harristoy , 1 Karine Angioi-Duprez , 2 Adrien Duprez , 3 ve Alain Lozniewski 1, *
                  Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                  Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
                  Git: SOYUT

                  Brokoli filizlerinde glukozinolat öncüsü formunda bol miktarda bulunan bir izotiyosiyanat olan sülforafan, Helicobacter pylori'ye karşı in vitro aktivite göstermiştir . Çıplak farelerde insan gastrik ksenograftları kullanarak sülforafanın bu bakteriye karşı in vivo etkisini değerlendirdik. H. pylori , sülforafan ile muamele edilmiş 11 greftin 8'inde tamamen eradike edildi. Bu sonuç, sülforafanın H. pylori ile enfekte bireylerin tedavisinde faydalı olabileceğini düşündürmektedir . Helicobacter pylori ile ilişkili hastalıkların günümüzde önerilen tedavisi, bir asit salgılama inhibitörü ile iki veya daha fazla antibiyotiğin bir kombinasyonunu içerir. Bununla birlikte, bu tedavilerle bile, bazı bakteriler büyümeyen, toleranslı bir biçimde veya muhtemelen hücre içinde kalabilir ( 5 , 7 , 10 ). Bu , antimikrobiyal tedavinin bitiminden en az 1 ay sonra H. pylori'nin kalıcılığı olarak tanımlanan eradikasyon başarısızlığına yol açabilir ( 9 ). Ayrıca, H. pylori suşlarının yaygın olarak kullanılan bir veya daha fazla antibiyotiğe karşı direnç geliştirdiği daha önce gösterilmiştir ( 28).). Bu nedenle, H. pylori'nin hücre dışı ve potansiyel olarak hücre içi formlarına karşı etkili olan yeni terapötik ajanlara ihtiyaç vardır. Yakın zamanda brokoli ve brokoli filizlerinde glukozinolat öncüsü formunda bol miktarda bulunan bir izotiyosiyanat olan sülforafanın, in vitro olarak hem hücre dışı hem de hücre içi H. pylori'ye karşı güçlü bir bakterisidal ajan olduğunu gösterdik ( 11 ). Önemli miktarlarda izotiyosiyanat (günde 100 mg'a kadar) ve bunların glukozinolat öncüllerinin daha da büyük miktarları insanlar tarafından yaygın olarak tüketilmektedir ( 12 , 13 , 29 ). Gastrointestinal sistem içinde lokal olarak hareket edebilirler veya aynı kökenli izotiyosiyanatlarına dönüştükten sonra sistemik olarak dağılabilirler.12 , 15 , 34 ). Bu çalışmada, çıplak farelerde insan mide ksenograftlarını kullanan yakın zamanda geliştirilmiş bir model kullanarak sülforafanın H. pylori'ye karşı in vivo etkinliğini araştırdık ( 22 ).

                  Sülforafan, yani [(-) - 1-isothiocyanato- (4 R ) - (metilsülfinil) bütan] nazik JW Fahey tarafından sağlandı (Tıp, Baltimore, MD, Johns Hopkins Üniversitesi).. Asetonitril içinde stok çözeltiler hazırlandı ve steril su içinde ilave seyreltmeler yapıldı. Daha önce gastrik ksenograft modelinde ( 23 ) kullanılmak üzere uyarlanmış olan H. pylori suşu 26695, greft aşılaması için kullanıldı. Suş, daha önce tarif edildiği gibi mikroaerobik koşullar altında %10 at kanı ile takviye edilmiş Columbia agar üzerinde büyütüldü ( 22 ). Bu izolat için, Ulusal Klinik Laboratuvar Standardı Komitesi (NCCLS) tarafından tavsiye edilen agar seyreltme yöntemi (pH 7.4) kullanılarak belirlendiği üzere sülforafanın MİK değeri 4 μg/ml idi ( 30).

                  İnsan olgun mide epitelyumu ve asidik salgı sergileyen ksenogreftler, daha önce tarif edildiği gibi ( 22 ) ve Fransız Ulusal Danışma Etik Kurulu'nun onayı ile çıplak farelerde elde edildi . Bakteriyel aşılama, ksenograft lümenine implante edilen bir kateter kullanılarak yapıldı ( 22 ). İnokülasyondan iki hafta sonra her greft mikrocerrahi olarak açıldı. Mukus, kanlı agar üzerinde kalitatif kültür için örneklendi ve kantitatif kültür ve histoloji için antrum-bitişik bölgelerden üç biyopsi alındı. Kolonizasyon seviyeleri ve hücre içi bakteri konsantrasyonları, daha önce tarif edildiği gibi kantitatif kültür ile belirlendi ( 23).). Histolojik çalışmalar için numuneler standart yöntemlerle işlendi ve gastrit yoğunluğunu değerlendirmek için hematoksilen-eozin ile ve H. pylori tespiti için modifiye Giemsa boyası ile boyandı ( 22 ).

                  Aşılanan hayvanlar rastgele 11'er kişilik iki gruba ayrıldı. Birinci gruba 7.5 µmol sülforafan (yaklaşık 1.33 mg) içeren %0.5 asetonitril içeren 0.5 ml steril su 5 gün boyunca günde bir kez kateter yoluyla uygulandı. Sülforafan içermeyen aynı solüsyon diğer 11 enfekte greftte (kontrol grubu) 5 gün boyunca aynı şekilde uygulandı. Sülforafanın H. pylori eradikasyonu üzerindeki etkisi, insan denekler için önceki tavsiyeye göre tedaviden 4 hafta sonra değerlendirildi ( 9). O sırada hayvanlara ötenazi uygulandı ve greftler çıkarılıp açıldı. Daha sonra histolojik inceleme ve mukozal kolonizasyon seviyesinin yanı sıra yukarıda tarif edildiği gibi hücre içi bakteri konsantrasyonlarının konsantrasyonunun belirlenmesi için antrumdaki bitişik bölgelerden üç biyopsi örneği alındı. Eradikasyon, hem histoloji hem de kültür yöntemleri ile H. pylori tespitinin olmaması ile tanımlandı . Bu değerlendirmeyi yapan personel tedavi durumuna göre maskelendi (körlendi). Her kültür pozitif greftten elde edilen tüm geri kazanılmış izolatlar için sülforafan MIC'si belirlendi.

                  Tedaviden önce, 22 aşılanmış greftin tümü H. pylori 26695 tarafından eşit olarak enfekte edildi , sülforafan almaya yönelik greftler ve kontroller arasında CFU sayılarında önemli bir fark yoktu ( P = 0.34, Mann-Whitney U testi) (Tablo)​(Tablo 1).1). Mukus veya mukoza örneklerinden H. pylori dışında hiçbir organizma elde edilmedi. Canlı hücre içi bakteriler de tüm greftlerde izole edildi ve mide mukozasında tespit edilen tüm canlı bakterilerin %0.04 ila 2.5'ini (ortalama, %0.9) temsil etti. O zaman, tüm aşılanmış greftlerde antrum yüzeyinde hemorajik noktalar veya ülserasyonlarla ilişkili nadir sınırlı eritemli alanlar gözlendi. Antral biyopsilerin histolojik incelemesi, H. pylori'nin varlığını doğruladıve yaygın interstisyel ödem ile ilişkili hafif inflamasyon ve hafif veya orta derecede aktivite gösterdi. Sülforafan veya plasebo (seyreltici araç kontrolü) uygulaması sırasında ve tedavi sonrası dönem boyunca, farelerde herhangi bir ters reaksiyon veya ağırlıkta veya davranışta değişiklik gözlenmedi. Ayrıca deneyler sonunda iç organlarda herhangi bir makroskopik veya histopatolojik değişiklik gözlemlemedik. Tedavinin bitiminden bir ay sonra, sülforafan uygulanmış 11 greftin 8'inde eradikasyon gözlendi (Tablo​(Tablo 1).1). Bu kültür negatif greftlerde ne makroskopik anormallikler ne de antral gastrit gözlenmedi. Kontrol grubu için, seyreltici uygulanmadan önce bulunan mukozal bakteri konsantrasyonları ile 5 hafta sonra bulunanlar arasında anlamlı bir fark yoktu ( P = 0.10, Mann-Whitney U testi) (Tablo​(Tablo 1).1). Sülforafan uygulanmış ve eradike edilmemiş greftlerde ve kontrol greftlerinde hem makroskopik hem de histolojik özellikler tedaviden önce gözlenenlere benzerdi. Hücre içi bakteriler, tüm kontrol greftlerinde (tespit edilen tüm canlı bakterilerin %1 ila %2.7'si) ve eradike edilmemiş üç sülforafan ile muamele edilmiş greftten ikisinde (tespit edilen tüm canlı bakterilerin %0.04 ve %0.3'ü) tespit edildi. Kontrol greftlerinden elde edilen izolatlar için, sülforafanın MIC'sinde herhangi bir değişiklik gözlenmezken, H. pylori'nin sülforafanla tedavi edilen üç greftten elde edilen tüm izolatlar için MIC'de dört kat artış (16 μg/ml'ye) gözlendi. yok edilmedi. Bu tür organizmalar, ilk inokulumun sülforafan içeren agar üzerine kaplanmasından sonra tespit edilmedi. TABLO 1.

                  İnsan mide ksenograftlarında sülforafanın H. pylori 26695'e karşı etkisi
                  Kontrol d ( n = 11) 0 6.92 (6.00-7.44) 5,53 (6,59-7,81) 11/11 11/11
                  Sülforafan e ( n = 11) 8 6.80 (6.04-7.57) 5.60 (3.16-8.03) f 11/11 2/3
                  a Eradikasyon, mide mukozasının kültürü ve histolojik incelemesi ile değerlendirildiği üzere H. pylori'nin yokluğu ile tanımlandı .
                  b Değerler, ortalamalar (aralıklar) olarak ifade edilir.
                  c Hücre içi bakterilerin varlığı, gentamisin varlığında 2 saat inkübasyondan sonra mide mukozasının kültürü ile değerlendirildi.
                  d 5 gün boyunca günde bir kez %0.5 asetonitril içeren steril su.
                  e Sülforafan (7,5 μmol) içeren %0,5 asetonitrilli steril su, 5 gün boyunca günde bir kez.
                  f H. pylori'nin eradike edilmediği üç greftte belirlendiği gibi .
                  Çok çeşitli bitki özleri, yani fitokimyasallar ve fitokimyasal karışımlar gibi bireysel bitki bileşenlerinin in vitro olarak H. pylori'ye karşı aktif olduğu gösterilmiştir ( 1 , 3 , 4 , 6 , 8 , 17 - 21 , 24 - 26 , 32 , 33 , 35 , 36 ). Bu fitokimyasallardan birkaçı in vivo olarak test edilmiştir ( 2 , 14 , 16 , 20 , 24 , 27 , 31), ancak H. pylori'nin temizlenmesi sadece iki durumda gözlemlendi: çay kateşinlerinin H. pylori ile enfekte gerbillere uygulanmasından sonra ( 24 ) ve goshuyu-to'nun uygulanmasından sonra, ginseng de dahil olmak üzere çeşitli bitki özleri içeren bir tıbbi preparat, insanlara ( 16 ). Bu nedenle, H. pylori'ye karşı aktif olan tüm bitki bileşiklerini, tüm organizma sistemlerinde etkinliklerini belirlemek için in vitro çalışmalara tabi tutmak çok önemlidir , çünkü bitki türevli bileşiklerin çoğu bu tür testlerde etkililiği kanıtlanmamıştır. Bu nedenle, yakın zamanda sülforafanın H. pylori'ye karşı aktif olduğunu göstermiş olmakin vitro olarak ve 5 hafta boyunca tahmini günlük 7.5 μmol alımının ardından ICR farelerinde benzo[a]piren kaynaklı mide tümörlerinin oluşumunu engellediğini ( 11 ), daha sonra aynı yöntemi kullanarak H. pylori'yi yok etme gücünü değerlendirdik. çıplak farelere implante edilen insan mide ksenograftlarında 5 gün boyunca doz. Mevcut çalışmada, tedavi edilen grup için %73'lük bir eradikasyon oranı gözlemlediğimiz ve kontrol grubunda hiçbir eradikasyon gözlemlemediğimiz için sülforafanın in vivo olarak H. pylori'ye karşı önemli bir etkiye sahip olduğunu gösterdik . Daha önceki çalışmalar, karşı konsantrasyona bağımlı bakteri öldürücü aktiviteye sahip olduğunu sülforafan, göstermişlerdir H. pylori birikebilir, H. pylori-enfekte hücreler ve uygulanan konsantrasyondan en az beş kat daha yüksek hücre içi seviyelere ulaşır, bu da hücre içi bakterilere karşı bakterisidal aktivitesinin bir nedeninin memeli hücrelerinde birikmesiyle ilgili olabileceğini düşündürür ( 11 ). Sülforafanın hücre içi birikiminin in vivo olup olmadığı henüz bilinmemektedir, ancak bu, çalışmamızda hücre içi bakterilerin varlığından sülforafanın etkinliğinin etkilenmemesinin bir nedeni olabilir. Sülforafanla muamele edilmiş 11 greftin sadece 3'ünde tam eradikasyon başarısızlığı gözlendi (deneyin doğası gereği, H. pylori üzerinde geçici bir etki olup olmadığını bilmek imkansızdı).kolonizasyon) ve bu tür başarısızlık her zaman sülforafanın MIC'sinin bir izolatın ilk aşılanması sırasındakinden dört kat daha yüksek olduğu izolatların mevcudiyeti ile ilişkilendirilmiştir. Duyarlılıktaki bu belirgin azalma, en azından kısmen, sülforafanın bu üç ksenograftta H. pylori'yi tamamen yok etmedeki başarısızlığını açıklayabilir . Subterapötik antibiyotik konsantrasyonlarının varlığı veya ilacın enfeksiyon bölgesinde zayıf stabilitesi gibi diğer nedenler göz ardı edilemez.

                  H. pylori'nin insan gastrik ksenograftlarından elde edilebilecek bir dozda (her ksenogreftte [hacim, ∼7 ml]; 0.19 mg/ml) kısa süreli sülforafan uygulamasından sonra eradike edilebileceğini gösterdik . insan diyeti (100 mg/gün [mide hacmi, 0,5 ila 1 litre]; 0,1 ila 0,2 mg/litre) ( 12 , 13 , 29 ). Bu nedenle, özellikle brokoli filizlerinden diyette güvenle uygulanabilen sülforafan uygulaması, H. pylori ile ilişkili mide hastalıklarının tedavisi için faydalı olabilir . Sülforafanla zenginleştirilmiş bir diyet, H. pylori'ye karşı profilaksi için de değerli olabilir.enfeksiyondur ve ayrıca değerlendirilmelidir. Ksenograftlar, bir bileşiğin, tamamen farklılaşmış insan mide mukozası ile etkileşime giren H. pylori üzerindeki etkisinin araştırılmasına izin veren tek in vivo modeli temsil eder . Bu model, gıdanın etkisine, sindirim fizyolojisine ve diğer bakteri türlerinin potansiyel bir arada bulunmasına tabi olan enfekte insan midesinin mikro ortamını tamamen taklit etmediğinden, sülforafanın in vivo aktivitesini doğrulamak için insanlarda daha ileri çalışmalar gereklidir. H. pylori'ye karşı .

                  Git: TEŞEKKÜR

                  Jed W. Fahey, Katherine K. Stephenson ve Paul Talalay'a (Farmakoloji ve Moleküler Bilimler Bölümü, Johns Hopkins Üniversitesi Tıp Fakültesi, Baltimore, Md.) sülforafan hediyeleri ve uzman editoryal tavsiyeleri için teşekkür ederiz.

                  Git: REFERANSLAR

                  1. Al Somal, N., KE Coley, PC Molan ve BM Hancock. 1994. Helicobacter pylori'nin manuka balının antibakteriyel aktivitesine duyarlılığı . JR Soc. Med. 87 : 9-12. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  2. Aydın, A., G. Ersöz, O. Tekesin ve E. Akçiçek. 2000. Sarımsak yağı ve Helicobacter pylori enfeksiyonu. NS. J. Gastroenterol. 95 : 563-564. [ PubMed ] [ Google Akademik ]
                  3. Bae, EA, MJ Han, NI Baek ve DH Kim. 2001. Ginseng'den izole edilen panaxytriolün in vitro anti- Helicobacter pylori aktivitesi. Kemer Eczacılık Araş. 24 : 297-299. [ PubMed ] [ Google Akademik ]
                  4. Bae, EA, MJ Han, NJ Kim ve DH Kim. 1998. Bitkisel ilaçların anti- Helicobacter pylori aktivitesi. Biol. Eczacılık Boğa. 21 : 990-992. [ PubMed ] [ Google Akademik ]
                  5. Björkholm, B., V. Zhukhovitsky, C. Löfman, K. Hultén, H. Enroth, M. Block, R. Rigo, P. Falk ve L. Engstrand. 2000. İnsan mide epitel hücrelerine Helicobacter pylori girişi: virülans, kalıcılık ve tedavi başarısızlıklarının potansiyel bir belirleyicisi. Helikobakter 5 : 148-154. [ PubMed ] [ Google Akademik ]
                  6. Boyanova, L. ve G. Neshev. 1999. Gül yağı ürünlerinin in vitro H. pylori büyümesi üzerindeki inhibitör etkisi : ön rapor. J. Med. Mikrobiyol. 48 : 705-706. [ PubMed ] [ Google Akademik ]
                  7. Brenciaglia, MI, AM Fornara, MM Scaltrito ve F. Dubini. 2000. Helicobacter pylori : kokoid formlarının yetiştirilebilirliği ve antibiyotik duyarlılığı. Int. J. Antimikrobiyal. Ajanlar 13 : 237-241. [ PubMed ] [ Google Akademik ]
                  8. Cowan, MM 1999. Antimikrobiyal ajanlar olarak bitkisel ürünler. Klinik. Mikrobiyol. Rev. 12 : 564-582. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  9. Dunn, BE, H. Cohen ve MJ Blaser. 1997. Helikobakter pilori. Klinik. Mikrobiyol. Rev. 10 : 720-741. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  10. Engstrand, L., DY Graham, A. Scheynius, RM Genta ve F. El-Zaatari. 1997. Kutsal alan, Helicobacter pylori'nin hücre içi antibakteriyel tedaviden kaçındığı yer mi? NS. J. Clin. Patol. 108 : 504-509. [ PubMed ] [ Google Akademik ]
                  11. Fahey, JW, X. Haristoy, PM Dolan, TW Kensler, I. Scholtus, KK Stephenson, P. Talalay ve A. Lozniewski. 2002. Sulforaphane, hücre dışı, hücre içi ve antibiyotiğe dirençli Helicobacter pylori suşlarını inhibe eder ve benzo[a]piren kaynaklı mide tümörlerini önler. Proc. Natl. Acad. bilim ABD 99 : 7610-7615. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  12. Fahey, JW, AT Zalcmann ve P. Talalay. 2001. Bitkiler arasında glukozinolatların ve izotiyosiyanatların kimyasal çeşitliliği ve dağılımı. Fitokimya 56 : 5-51. [ PubMed ] [ Google Akademik ]
                  13. Fenwick, GR, PK Heaney ve WJ Mullin. 1983. Gıda ve gıda tesislerinde glukozinolatlar ve bunların parçalanma ürünleri. Krit. Rev. Gıda Bilimi. Nutr. 18 : 123-201. [ PubMed ] [ Google Akademik ]
                  14. Graham, DY, SY Anderson ve T. Lang. 1999. Helicobacter pylori enfeksiyonunun tedavisi için sarımsak veya jalapeno biberi . NS. J. Gastroenterol. 94 : 1200-1202. [ PubMed ] [ Google Akademik ]
                  15. Halliwell, B., K. Zhao ve M. Whiteman. 2000. Gastrointestinal sistem: önemli bir antioksidan etki alanı mı? Serbest Radikal Arş. 33 : 819-830. [ PubMed ] [ Google Akademik ]
                  16. Higushi, K., T. Arakawa, K. Ando, ​​Y. Fujiwara, T. Uchida ve T. Kuroki. 1999. Dirençli koloniler ortaya çıkmadan bir Çin bitkisel ilacı ile Helicobacter pylori'nin eradikasyonu . NS. J. Gastroenterol. 94 : 1419-1420. [ PubMed ] [ Google Akademik ]
                  17. Ingolfsdottir, K., MA Hjalmarsdottir, A. Sigurdsson, GA Gudjonsdottir, A. Brynjolfsdottir ve O. Steingrimsson. 1997. Helicobacter pylori'nin liken Cetraria islandica'dan protolichesterinik aside in vitro duyarlılığı . Antimikrobiyal. Ajanlar Chemother. 41 : 215-217. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  18. Jones, NL, S. Shabib ve PM Sherman. 1997. Gastrik patojen Helicobacter pylori'nin büyümesinin bir inhibitörü olarak kapsaisin . FEMS Mikrobiyol. Lett. 146 : 223-227. [ PubMed ] [ Google Akademik ]
                  19. Kadota, S., P. Basnet, E. Ishii, T. Tamura ve T. Namba. 1997. Rabdosia trichocarpa kaynaklı trichorabdal A'nın Helicobacter pylori'ye karşı antibakteriyel aktivitesi . Zentbl. bakteriol. 286 : 63-67. [ PubMed ] [ Google Akademik ]
                  20. Kataoka, M., K. Hirata, T. Kunikata, S. Ushio, K. Iwaki, K. Ohashi, M. Ikeda ve M. Kurimoto. 2001. Indigo bitkisinden ( Polygonum tinctorium Lour.) izole edilen triptantrin ve kaempferolün, Helicobacter pylori ile enfekte Moğol gerbillerine karşı antibakteriyel etkisi . J. Gastroenterol. 36 : 5-9. [ PubMed ] [ Google Akademik ]
                  21. Kubo, J., JR Lee ve I. Kubo. 1999. Kaju elmasından Anti- Helicobacter pylori ajanları. J. Agric. Gıda Kimyası 47 : 533-537. [ PubMed ] [ Google Akademik ]
                  22. Lozniewski, A., F. Muhale, R. Hatier, A. Marais, MC Conroy, D. Edert, A. Le Faou, M. Weber ve A. Duprez. 1999. Çıplak farelerde insan embriyonik mide ksenograftları: Helicobacter pylori enfeksiyonunun yeni bir modeli . Bulaş. bağışık. 67 : 1798-1805. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  23. Lozniewski, A., X. Haristoy, DA Rasko, R. Hatier, F. Plénat, DE Taylor ve K. Angioi-Duprez. 2003. Helicobacter pylori tarafından Lewis antijen ekspresyonunun gastrik epitel hücreleri tarafından bakteriyel içselleştirme üzerindeki etkisi . Bulaş. bağışık. 71 : 2902-2906. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  24. Mabe, K., M. Yamada, I. Oguni ve T. Takahashi. 1999. Çay kateşinlerinin Helicobacter pylori'ye karşı in vitro ve in vivo aktiviteleri . Antimikrobiyal. Ajanlar Chemother. 43 : 1788-1791. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  25. Mahady, GB, H. Matsuura ve SL Pendland. 2001. Sarımsaktan elde edilen bir fitoaleksin olan Allixin, in vitro olarak Helicobacter pylori'nin büyümesini engeller . NS. J. Gastroenterol. 96 : 3454-3455. [ PubMed ] [ Google Akademik ]
                  26. Mahady, GB ve SL Pendland. 2000. Resveratrol, Helicobacter pylori'nin in vitro büyümesini engeller . NS. J. Gastroenterol. 95 : 1849. [ PubMed ] [ Google Akademik ]
                  27. McNulty, CAM, MP Wilson, W. Havea, B. Johnston, EA O'Gara ve DJ Maslin. 2001. Helicobacter pylori'li dispeptik hastaların tedavisinde sarımsak yağı kapsüllerinin etkinliğini belirlemek için bir pilot çalışma . Helikobakter 3 : 249-253. [ PubMed ] [ Google Akademik ]
                  28. Mégraud, F. 2003. Antibiyotiklere karşı Helicobacter pylori direnci: yaygınlık, mekanizmalar, tespit. Ne var ne yok? Yapabilmek. J. Gastroenterol. 17 (Ek B) : 49B-52B. [ PubMed ] [ Google Akademik ]
                  29. Mullin, WJ ve HR Sahasrabudhe. 1978. Ortalama günlük glukozinolat alımının bir tahmini. Nutr. Temsilci Int. 18 : 273-279. [ Google Akademik ]
                  30. Klinik Laboratuvar Standartları Ulusal Komitesi. 2000. Aerobik olarak büyüyen bakteriler için seyreltme antimikrobiyal duyarlılık testleri için yöntemler. Onaylı standart M7-A5. Ulusal Klinik Laboratuvar Standartları Komitesi, Wayne, Pa.
                  31. Nir, Y., I. Potasman, E. Stermer, M. Tabak ve I. Neeman. 2000. Tarçın ekstraktının Helicobacter pylori üzerindeki etkisinin kontrollü denemesi . Helicobacter 5 : 94-97. [ PubMed ] [ Google Akademik ]
                  32. O'Gara, EA, DJ Hill ve DJ Maslin. 2000. Sarımsak yağı, tozu ve bunların dialil bileşenlerinin Helicobacter pylori'ye karşı aktiviteleri . Uygulama Çevre. Mikrobiyol. 66 : 2269-2273. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  33. Ohta, R., N. Yamada, H. Kaneko, K. Ishikawa, H. Kukuda, T. Fujino ve A. Suzuki. 1999. Yağ ile işlenmiş sarımsak bileşenleri tarafından Helicobacter pylori büyümesinin in vitro inhibisyonu . Antimikrobiyal. Ajanlar Chemother. 43 : 1811-1812. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                  34. Shapiro, TA, JW Fahey, KL Wade, KK Stephenson ve P. Talalay. 2001. Brokoli filizlerinin kemoprotektif glukozinolatları ve izotiyosiyanatları: insanlarda metabolizma ve atılım. Kanser Epidemiol. Biyomark. Önceki 10 : 501-508. [ PubMed ] [ Google Akademik ]
                  35. Tabak, M., R. Armon ve I. Neeman. 1999. Tarçın özütünün Helicobacter pylori üzerindeki inhibitör etkisi . J. Etnol. farmakol. 67 : 269-277. [ PubMed ] [ Google Akademik ]
                  36. Tabak, M., R. Armon, I. Potasman ve I. Neeman. 1996. Kekik özleri ile Helicobacter pylori'nin in vitro inhibisyonu . J. Uygulama Bakteriyol. 80 : 667-672. [ PubMed ] [ Google Akademik ]

                  Yorum yap


                  • #10
                    sülforafan

                    sulforaphane.pngSulforaphane-3D-balls.pngSulforaphane-3D-vdW.png

                    Sülforafan (bazen İngiliz İngilizcesinde sülforafan ), organosülfür bileşiklerinin izotiyosiyanat grubu içindeki bir bileşiktir . [1] Brokoli , Brüksel lahanası ve lahana gibi turpgillerden elde edilir . Mirosinaz enzimi , bir glukosinolat olan glukorafanini , bitkiye zarar vermesi üzerine (gıda hazırlama sırasında çiğneme veya kaynatma gibi) sülforafan'a dönüştürdüğünde üretilir, bu da iki bileşiğin karışmasına ve reaksiyona girmesine izin verir . genç filizler brokoli ve karnabahar özellikle glukorafanin açısından zengindir. [1]
                    İçindekiler
                    Sülforafan, turpgillerden sebzeler arasında, sülforafanın öncüsü olan en yüksek glukorafan konsantrasyonuna sahip olan brokoli filizlerinde oluşur. [1] [2] Ayrıca lahana , karnabahar , Brüksel lahanası , Çin lahanası, lahana , karalahana , hardal yeşillikleri ve su teresinde bulunur . [1]Araştırma [ düzenle ]


                    Sülforafanın in vivo olarak nasıl yararlı etkiler gösterebileceğine dair bazı temel araştırmalar olmasına rağmen , insan hastalıklarına karşı etkinliğine dair yüksek kalitede kanıt yoktur. [1] [3]
                    1. ^Yukarı atla:a b c d e "İzotiyosiyanatlar". Linus Pauling Enstitüsü. Mikrobesin Bilgi Merkezi, Linus Pauling Enstitüsü, Oregon Eyalet Üniversitesi. Mart 2017. 19 Kasım 2018'dealındı.
                    2. ^ Houghton, Kaliforniya; Fastett, RG; Coombes, JS (2013). "Sülforafan: Laboratuvar tezgahından kliniğe çeviri araştırması". Beslenme İncelemeleri . 71 (11): 709–26. doi : 10.1111/nure.12060 . PMID 24147970 .

                    Yorum yap


                    • #11
                      Brokoli Yemeniz İçin Bir Başka Sebep

                      Tip 2 diyabet dünyada gittikçe yaygınlaşıyor ve tüm hastalar mevcut ilaçlarla başarıyla tedavi edilemiyor. Axelsson Tip 2 diyabet ile ilişkili gen tabiri modelini analiz etti ve diyabetin etkilerine karşı koyabilecek bileşikleri bulmak için binlerce ilaç adayının gen işaretleriyle karşılaştırdı. Brokoli Yemeniz İçin Bir Başka Sebep
                      21 HAZİRAN 2017, ÇARŞAMBA

                      Bu analizin önde gelen adayı brokoli ve diğer sebzelerde bulunan doğal bir bileşik olan sülforafan idi. Yazarlar, sülforafanın, üretilmiş hücrelerinde glikoz üretimini engellediğini ve yüksek yağ veya yüksek fruktozlu diyetlerde kemirgenlerde glukoz toleransını arttırdığını gösterdi. Ayrıca, bir klinik araştırmasına göre, obezite ve düzensiz tip 2 diyabetli insan hastalarda sülforafan içeren brokoli filizi özütüne müsamaha edildi ve açlık glukoz düzeyi iyileşti.


                      Sülforafan Nedir?

                      Sülforafan (Sulforaphane) brokoli, brüksel lahanası, lahana, karnabahar ve karalahana gibi lahana ailesinden gelen bitkilerde bulunan bir kimyasaldır. Bu madde son zamanlarda birçok sağlık dergilerinde yer aldığından oldukça popüler olmaya başlamıştır.

                      Brokoliyi pişirme süreci, sülforafanın sindirilmesini azaltır, pişmiş brokolideki sülforafanın sadece %3,4’ü kana karışır, oysa bu oran çiğ brokolide %37’dir. Çiğ brokoli tüketiminden sonra, kandaki sülforafan düzeyi 1,6 saat sonra zirve yapar, ama pişmiş brokolideki sülfarofanın zirve yapması 6 saat sonrasıdır.

                      1997’de araştırmacılar brokolinin tohumdan yeni çıkmış 3-4 günlük filizlerin “sulforaphane” oranının erişkin sebzeye göre çok daha fazla olduğunu tespit etmişlerdir. Araştırmacılar, 3 günlük brokolinin, 10-100 kat daha fazla sülforafan içerdiğini bulmuşlardır. Johns Hopkins Üniversitesi bilim adamları tarafından geliştirilen brokoli türünün tohumundan elde edilen ve yüksek miktarda sülforafan glukosinolat içeren brokoli özü, Johns Hopkins Üniversitesi patenti ile “Broccosprouts” adıyla satılmaktadır.


                      Teorik

                      İlaç keşfi için potansiyel olarak yararlı bir yaklaşım, hastalıktan etkilenen dokuların gen ifadesi profillerini "hastalık işaretleri" ilaç işaretlerine bağlamaktır, ancak klinik olarak ilgili tedavi seçeneklerini tanımlamak için kullanılabileceği gösterilmeye devam etmektedir. Karaciğer dokusunda Tip 2 diyabet için bir hastalık işareti belirlemek için birlikte ifade ağları ve genetik verilerini analiz ettik. 3800 ilaç imzalı bir kütüphaneye sorgulayarak, sülfrofan hastalık imzasını tersine çeviren bir bileşik olduğunu tespit ettik. Sülfrofan, nükleer faktör eritroid 2-ilişkili faktör 2'nin (NRF2) nükleer translokasyonu ve glukoneogenezde anahtar enzimlerin azaltılması ile karaciğer hücrelerinde glikoz üretimini bastırdı. Dahası, sulforafan diyabetik hayvanlardan alınan karaciğerlerdeki hastalık işaretini tersine çevirdi ve abartılı glikoz üretimi ve glukoza dayanamama metformine benzer bir büyüklükte azaltıldı. Son olarak konsantre brokoli filizi özü olarak verilen sülfrofan, düzensiz tip 2 diyabetli obez hastalarda açlık kan şekeri ve glikozillenmiş hemoglobin (HbA1c) 'yi düşürdü.


                      http://stm.sciencemag.org/content/9/394/eaah4477

                      Yorum yap


                      • #12
                        Sülforafan Nedir, Faydaları Ve Yan Etkileri Nelerdir?

                        Paylaş
                        Sülforafan (SFN), kükürt içeren organik bileşik olan bir izotiyosiyanattır. Brokoli, karnabahar, Brüksel lahanası ve lahana gibi turpgillerde bulunmaktadır. Sülforafan, aynı hücrelerde fakat farklı bölmelerde bulunan glukofafanin enzim miyrozinaz ile temas ettiğinde üretilmektedir. Örneğin, brokoli bitki hücrelerinin kesilmesi, çiğnenmesi veya başka bir şekilde parçalanması sülforafan üretimini başlatmaktadır. Stabil glukorafin ile karşılaştırıldığında, sülforafan üretimden kısa bir süre sonra bozulmaya başlamaktadır. Bazı turpgillerden elde edilen üç günlük filizler, olgun bitkilerden 10 ila 100 kat daha fazla glukofafanin içermektedir.
                        Glukorafin ve sülforafan düzeyleri brokoli filizlerinde en yüksektir. Sülforafan, antioksidan, antimikrobiyal, antikanser, antienflamatuar, yaşlanma karşıtı, nöroprotektif ve anti-diyabetik özelliklere sahiptir. Ayrıca sülforafan kardiyovasküler ve nörodejeneratif hastalıklara karşı da koruma sağlamaktadır. Sülforafan dışında brokoli filizi, gallik, klorojenik, ferulik, sinapinik, benzoik ve salisilik asitler, quercetin, kaempferol ve C vitamini gibi biyoaktif, sağlığı geliştiren birçok bileşik içermektedir. Bununla birlikte sülforafan, glukorafanin miyrosinaz adı verilen bir enzime temas ettiğinde oluşan kükürt içeren bir bileşiktir. En çok brokoli filizi ve diğer turp sebzelerinde bol miktarda bulunmaktadır. Kanser Araştırması

                        Prostat kanseri: Sülforafan brokoli filiz ekstresi formunda bulunmaktadır, prostat kanserinin önlenmesinde ve nüksetmesini önlemek için yönetim stratejilerinde rol için nispeten güçlü klinik kanıtlara sahiptir. Birden fazla klinik çalışmada, günde 60 mg sülforafan alan tekrarlayan prostat kanseri olan erkeklerde, sülforafan almayanlardan daha az prostata özgü antijen olduğu bildirilmiştir. PSA, prostat kanserinin ilerlemesini ölçmek için kullanılan bir belirteçtir. Bununla birlikte FDA, prostat kanseri nüksünün önlenmesi için sülforafan onaylamamıştır. Kişi bunu tamamlamadan önce doktoruyla görüşmelidir.

                        Diğer kanserler: Çalışmalar prostat kanserinde sülforafan için ilerlemesine rağmen, diğer kanser türlerine karşı olası eylem için de araştırılmaktadır. Sülforafan birkaç nedenden dolayı umut verici bir bileşik olarak kabul edilmektedir; bunlardan en önemlisi, sülforafan bakımından zengin Brassica sebzeleri yiyen kişilerin kanser geliştirme olasılığının önemli ölçüde düşük olmasıdır. Haftada üç ila beş porsiyon Brassica, bu sebzeleri yemeyen kişilere kıyasla kanser insidansında % 30 ila % 40 düşüş ile ilişkilidir. Haftada turpgillerden en az bir bölümünü tüketen deneklerin ağız boşluğu, farenks, özofagus, kolorektal, meme ve böbrek kanserleri geliştirme olasılığı daha düşüktür. Ayrıca araştırmacılar sülforafanın hayvanlarda glioblastoma, tiroid, prostat, meme, dil ve akciğer kanserine karşı potansiyelini araştırmaktadır. Brokoli sıçanlarda doza bağlı mesane kanseri gelişimini ve farelerde UV kaynaklı cilt kanserini inhibe etmektedir. Olası Mekanizmalar

                        • SFN, pro-karsinojenleri aktive edebilen faz I enzimlerini inhibe etmektedir
                        • SFN, DNA’ya zarar veren kimyasalların yok edilmesinden sorumlu olan faz II enzimlerini indüklemektedir
                        • SFN gen aktivasyonunu/deaktivasyonunu değiştirmektedir ve demetilasyona neden olmaktadır, böylece önemli tümör baskılayıcı ve hücre döngüsü kontrol eden genlerin aktivitesini geri kazandırmaktadır
                        • Sülforafan kanser hücresi ölümüne neden olmaktadır
                        • Sülforafan NF- pathB yolunu inhibe etmektedir, böylece inflamasyonu azaltmaktadır
                        • Sülforafan, hücre döngüsü durmasını indüklemektedir ve böylece kanser hücresi çoğalmasını önlemektedir
                        Kendi başına etkili olmasının yanı sıra, sülforafan, cisplatin, gemsitabin, doksorubisin ve 5-florourasil dahil olmak üzere anti-kanser ilaçlarının pankreatik ve prostat kanseri hücrelerine karşı etkinliğini artırabilirken, normal hücrelere toksisitelerini sınırlayabilmektedir. Bununla birlikte, sülforafan çeşitli çalışmalarda güvenli ve etkili bulunmasına rağmen, iki klinik çalışmada etkili olmamıştır. Sülforafanın geleneksel kanser tedavilerine dahil edilmesinden önce ilave çalışmalar gerekmektedir. Sülforafan ve sülforafan açısından zengin yiyecekleri, kanseri önlemek veya tedavi etmek yerine, herhangi tıbbi amaçla kullanmaya çalışmadan önce doktorla görüşülmelidir. Bununla birlikte sülforafan, tekrarlayan prostat kanserini önleme potansiyeli ve diğer bazı klinik ortamlarda araştırılmaktadır. Sülforafan Yan Etkileri

                        Sülforafan, brokoli ve diğer yeşilliklerde mevcut miktarlarda tüketildiğinde güvenli kabul edilmektedir ve brokoli filizlerinin, ekstraktlarının veya saflaştırılmış sülforafanın klinik çalışmalarında çok az yan etki gözlenmiştir. Bununla birlikte, takviyeler standart değildir ve uzun süreli sülforafan kullanımının güvenliğini belirlemek için yeterli veriye sahip değildir. Olumsuz etkilerden veya beklenmedik etkileşimlerden kaçınmak için kişi doktoruyla görüşmelidir.
                        1) Genom stabilitesi: Sülforafan, tümör baskılayıcı genler dahil olmak üzere birçok yararlı genin aktivasyonunu arttırdığı görülmektedir. Bununla birlikte, sülforafan ayrıca genom stabilitesini bozan ve mutasyonlara neden olan genomda bulunan uzun terminal tekrarlarını (LTR’ler), DNA dizilerini aktive etmektedir. İnsan gönüllüler tarafından brokoli filizlerinin tüketimi, beyaz kan hücrelerinde LTR aktivasyonunda 10 kat artışa neden olmuştur. Bu etkiler geçicidir ve biyolojik olarak anlamlı olup olmadıklarının belirlenmesi gerekmektedir. İnsan gönüllüler üzerinde yapılan diğer çalışmalar, brokoli filiz tüketimi ile ilgili anormal bir olay kaydetmemiştir. Genotoksik etkiler, 12 gün boyunca 600 g çiğ brokoli ile beslenen domuzlarla yayınlanmamış çalışmalarda gözlenmiştir. Bu domuzların kolondaki DNA iplik kopmalarında % 21 oranında bir artış olmuştur. Ayrıca fareler ve sıçanlar çiğ veya buğulanmış brokoliyle beslendikten sonra DNA eklentilerinde (DNA’ya bağlanan kansere neden olan kimyasallar) bir artış gözlenmiştir. Bununla birlikte, hayvanlardaki tüm bu etkiler olgun brokoli bitki tüketimi için gözlenmiştir. Brokoli filizlerinin ek bir yararı, olgun sebzede baskın olan ve bozunma ürünlerine örneğin, indol-3-karbinol neden olabilecek ihmal edilebilir miktarlarda indol glukosinolat içermesidir. Bu tümör oluşumunu artırmaktadır. Sülforafan gen ekspresyonunu etkiler gibi görünmektedir. Hayvanlarda, brokoli bitkileri tüketmek genotoksik etki potansiyeline sahiptir.
                        2) Karaciğer toksisitesi: 4 hafta boyunca (800 ml/gün) çok miktarda brokoli suyu içtikten sonra karaciğer toksisitesi üzerinde araştırma yapılan tek bir vaka bildirimi bulunmaktadır. Bu vaka transaminazlar, aspartat aminotransferaz ve c-glutamiltrans-peptidaz yükselmiş, ancak 15 gün içinde normale düşmüştür. Bu olgun bitkinin tüketilmesinden de kaynaklanmıştır ve sülforafanın katkısı bilinmemektedir. Daha fazlasını öğrenene kadar dikkatli olunması önerilmektedir. Gıda Kaynakları

                        Sülforafan (glukofafanin) miktarı sebzelerde büyük ölçüde değişmektedir. Brokoli, SFN’ye sahip tek turpgiller değildir, ancak toplam glukosinolatların yaklaşık % 75’inde glukofafanin içeriğiyle en yüksek miktarları vermektedir. Ayrıca 3 günlük brokoli filizi, olgun bir brokoli’den 10 ila 100 kat daha fazla glukofafanin içermektedir. Brokoli filizleri Brüksel lahanası ile karıştırılmamalıdır ve ayrıca Brüksel lahanası da sülforafan içermektedir. Yüksek sülforafan içeriğine sahip sebzeler bulunmaktadır ve bunlar aşağıdaki gibidir:
                        • Brokoli filizi
                        • Brüksel lahanası
                        • Süs lahanası
                        • Lahana
                        • Karnabahar
                        Ayrıca turpgiller sebzeleri en iyi diyet sülforafan kaynaklarıdır ve bunlar arasında brokoli filizi en zengin olanıdır. Genetik ve Sülforafan Metabolizması

                        GST’ler, glutatyonu vücuttan detoksifiye edilmesi gereken maddeye bağlayan geniş bir glutatyon konjüge enzimler ailesidir. Bunlardan üçü, GSTM1, GSTP1 ve GSTT1, izotiyosiyanatların ve özellikle sülforafanın metabolizmasında rol oynamaktadır.
                        GSTM1 genindeki SNP’ler
                        Null mutasyonlar GSTM1 fonksiyonel enzimin yokluğu içinde sonuçlanmaktadır. İnsan popülasyonlarında GSTM1-null varyantının sıklığının % 27 ile 53 arasında olduğu tahmin edilmektedir. GSTM1-null mutasyonları olan bireyler, azalmış SFN degradasyonu nedeniyle SFN’den daha fazla yararlanmaktadır, bu nedenle maruziyeti arttırmaktadır. Bununla birlikte, diğer bazı çalışmalar aksini önermektedir. Bu çalışmalarda GSTM1-pozitif bireyler, GSTM1-null bireylere kıyasla brokoli veya turpgillerden sebze tüketiminden daha fazla faydalanmıştır. GSTM1-null taşıyıcılar daha fazla SFN ve SFN-metaboliti salgılamaktadır ve atılım daha hızlı olmaktadır. Ayrıca GSTM1 genindeki bazı mutasyonlar, kirleticileri ve diğer toksinleri detoksifiye etme kapasitesini azaltmaktadır ve GSTM1 varyantları sülforafan metabolizmasını değiştirmektedir.

                        GSTT1 genindeki SNP’ler
                        GSTT1 genindeki boş mutasyonlar, fonksiyonel bir enzimin bulunmamasına neden olmaktadır. GSTT1-null varyasyonunun sıklığının Kafkas popülasyonları için % 10 ila 21 arasında ve Asya popülasyonları için % 64’e kadar olduğu tahmin edilmektedir. Brokoli filizi, GSTT1-pozitif taşıyıcılar boş taşıyıcılara kıyasla havadaki kirliliğe maruz kaldığında detoksifikasyonda daha etkili olmaktadır. GSTT1 genindeki SNP RS2266637’dir
                        GSTP1 genindeki SNP’ler
                        • RS1138272
                        • RS1695
                        • RS1871042
                        • RS6591256
                        • RS749174
                        • RS8191439
                        • RS947895 Sülforafan Etki Mekanizması
                        Dolaylı bir antioksidan olarak:


                        • SFN, durdurulan Keap1’i bağlayarak Nrf2 sistemini etkinleştirmektedir
                        • SFN, Keap1 ile reaksiyona girerek Keap1 bağlanmasından Nrf2’yi serbest bırakmaktadır
                        • SFN, ARE güdümlü gen ekspresyonunu teşvik etmektedir
                        • SFN diğer faz II enzimlerini arttırmaktadır ve bunlar NQO1, GSTA1 ve HO-1’dir
                        • SFN, faz I enzimleri CYP1A1, CYP1A2, CYP1 B1, CYP2 B2 ve CYP3A4’ü inhibe etmektedir
                        • SFN blokları SXR’dir
                        Enflamasyon:
                        • SFN, NfkB’yi inhibe etmektedir
                        • SFN, TNF-a, NLRP3, IL-1, IL-18, IFN-gama ve IL-6 azalmaktadır
                        • SFN, IL-10’u ve IL-4 Arg1 ve YM-1’i arttırmaktadır
                        • SFN NO, iNOS ve COX-2’yi azaltmaktadır
                        • SFN Th17 / Th1 yanıtlarını susturur
                        • SFN, IL-17’yi azaltmaktadır
                        • SFN TGF -β / Smad’ı azaltmaktadır
                        • SFN IL-23 ve IL-12 ekspresyonunu azaltmaktadır
                        • SFN MMP-9’u azaltmaktadır
                        • SFN LDH’yi ve PGE2 azaltmaktadır
                        Gen ifadesi:
                        DNA hipermetilasyonu, tümör baskılayıcı genleri, hücre döngüsü regülasyonu ve apoptozunda (hücre ölümü) yer alan genleri inhibe etmektedir. DNA metiltransferazlar (DNMT’ler) metilat DNA ve lösemi, mide, akciğer ve prostat kanseri dahil olmak üzere birçok kanserde aşırı DNMT ekspresyonu gözlenmektedir.
                        • Sülforafan DNMT1 ve DNMT3A
                        • SFN, bugüne kadar bulunan en güçlü (histon deasetilaz) HDAC inhibitörlerinden biridir
                        • SFN HDAC1, HDAC2, HDAC3 ve HDAC4 inhibe etmektedir
                        • SFN miR-21 ve TERT azaltmaktadır
                        Kansere karşı:
                        • SFN kaspaz-3, kaspaz-7, kaspaz-8, kaspaz-9’u aktive etmektedir
                        • SFN anti-apoptotik Bcl-2 ve Bcl-XL’yi azaltmaktadır
                        • SFN Proapoptotik Bax arttırmaktadır
                        • SFN, p21 (CDKN1A) ve p53’ü indüklemektedir
                        • SFN, PARP’ı devre dışı bırakır
                        • SFN, HIF1A’yı düşürmektedir
                        • SFN, katenin’i (CTNNB1) azaltmaktadır
                        Kilo yönetimi:
                        • SFN’nin neden olduğu beyaz adipositlerin (yağ hücrelerinin) yıkanması
                        • SFN PPARy ve C/EBPa’yı azaltmaktadır
                        • SFN AMPK artmaktadır
                        Sülforafan, lahana ve brokoli gibi turpgillerden oluşan sebzelerde bol miktarda bulunan organik bir bileşiktir. Ayrıca en zengin diyet sülforafan kaynağı brokoli filizidir. Sülforafan, tekrarlayan prostat kanserini önleme potansiyeli ve diğer birçok klinik onkolojik ortamda araştırılmaktadır. Bu bileşiği kanserin önlenmesinde veya tedavisinde önerilecek kadar yakın kanıt bulunmamaktadır. Bu araştırma uzun süreli sağlık için sağlıklı, sebze açısından zengin bir diyetin önemini desteklememektedir. Bazı hayvan araştırmaları, sülforafanın DNA’yı bozma veya karaciğere toksik olma potansiyeline sahip olduğunu göstermektedir. Bazı kişiler, vücutlarının işleme ve metabolize etme şeklini değiştiren genetik varyantlara sahip olmaktadır.

                        Kaynakça:
                        onegreenplanet.org
                        drjohnday.com
                        nutritionfacts.org
                        sunnycreekfarm.com

                        Yorum yap


                        • #13
                          Sülforafan Nedir? Ne İşe Yarar? Hangi Besinlerde Bulunur? Kanseri Önleyebilir Mi?

                          Kanser Karşıtı Sebzeler Nelerdir?
                          Paylaş
                          Günümüzde yanlış beslenmenin, kansere sebep olabildiği gibi; doğru beslenme örüntüsünün, anti-kanser özellikler göstererek kansere karşı koruyucu, kanser riskini azaltıcı bir faktör olduğu bilimsel bir gerçek olarak bilinmektedir. Kanser Karşıtı Sebzeler Nelerdir?

                          Amerikan Kanser Enstitüsü, diyetle alınan sebze ve meyvelerin önemini, 5-9 porsiyon günlük alım miktarıyla vurgular. Sebzeler ve meyveler, kanser karşıtı maddelerin doğal kaynağıdırlar. Bu konuda öne çıkan sebze gruplarından birisi de krusifer grubu sebzelerdir. Brokoli, karnabahar, beyaz lahana, kara lahana, brüksel lahanası ve turp bu grupta yer alan sebzelerdendir. Eski zamanlardan beri bu sebzelerin faydaları bilinmiş ve tedavi edici olarak halk sağlığında kullanılmıştır.
                          • Bulunan eski belgelerde, ezilmiş lahana yaprağının ‘göğüsteki kanserli ülser’i iyileştireceği yönünde notlar bulunmuştur.

                          Krusifer grubu sebzeler, kansere çok daha etkili ve güçlü bir şekilde koruyuculuk sağlar ve bunu, bünyesindeki biyoaktif maddeler sayesinde gerçekleştirmektedir. İçeriğindeki biyoaktif maddelerden en bilineni ise glukozinolatlardır. Bu bileşikler, krusifer grubu sebzelerdeki acı ve keskin tadın sebebi olup, bitkiye zarar veren durumlarda salınırlar. Bitkinin kendisinde ya da insan bağırsak mikroflorasında bulunan mirosinaz enzimiyle hidrolize olmadığı sürece, bu bileşik kanserden koruyucu özellik göstermez.


                          Hidroliz sonucu izotiyosiyanat ya da indol-3 karbinollere dönüşerek etki gösterirler ki en bilinen izotiyosiyanatlardan biri sülforafandır. Sülforafanın ön maddesi ise glukorafanindir. Glukorafanin içeriği en yüksek krusifer grubu sebze olarak brokoli ve brokoli filizleri belirlenmiştir. Bu sebeple çalışmalar, en çok brokoli üzerinden yapılmıştır.

                          Brokoli ve Kanser İlişkisini İnceleyen Çalışmalar

                          İLGİLİ MAKALELER

                          mTOR Nedir? Oluşturduğu Sinyal Yolağının Etkileri Nelerdir?

                          Mide Kanseri Nedir? Tıbbi Beslenme Tedavisi Nasıl Olmalıdır?

                          Onkoloji Hastalarında Beslenme Tedavisi Nasıl Olmalıdır?

                          Brokoli ve brokoli filizlerinden elde edilen doğal bileşik olan sülforafanın, anti-kanser aktivitesine sahip olduğu, günümüze kadar yapılmış olan pek çok farklı çalışmayla kanıtlanmıştır.
                          • Sülforafanın, hücreleri kansere dönüşmeden baskılayarak kanseri başlangıçta önleyebildiği veya kanser başladığında apoptozu* uyararak, hücre döngüsünü durdurarak ilerlemenin önüne geçebildiği görülmüştür.
                          • Bazı çalışmalar; brokoliden zengin bir diyetin, bazı kanser türlerinde riski azaltabileceğini göstermiştir. Bu özelliğinden dolayı brokoli; mide, kolorektum, akciğer, prostat, meme, mesane, endometriyum ve cilt kanseri için koruyucu ve risk azaltıcı bir diyet faktörü olarak değerlendirilmektedir.
                          • Mevcut kemoterapi ve radyoterapi tedavileriyle, kök hücre popülasyonunun baskılanması sağlanamamaktadır. Ancak yapılan invivo* ve invitro* çalışmalarda; sülforafanın, meme kanseri kök hücrelerini inhibe* etmesi durumu, brokoli ve brokoli filizi ekstratlarının kansere karşı koruyucu özelliğinin kanıtlanabilirliğini arttırmaktadır.
                          • Yine yapılan çalışmalar; premenopozal dönemdeki kadınlarda brokoli tüketiminin, meme kanseri riskini azalttığını belirtmektedir.
                          • Epidemiyolojik çalışmalar sonucunda; diyetle krusifer grubu sebze alımının, Batı toplumlarındaki erkeklerde, kansere bağlı ölümlerde ikinci sırayı alan prostat kanserinin riskini azalttığı gözlemlenmiştir. Sülforafan ile zenginleştirilmiş bir diyet, prostat kanserine karşı koruyucu bir potansiyel olarak görülmektedir.
                          • 2000 yılında yapılan bir çalışmada; yüksek ve düşük kalitede krusifer grubu sebzelerden tüketen kişilerin, prostat kanseri riskinde %39 azalma görüldüğü kaydedilmiştir.
                          • Dünya Kanser Araştırma Fonu ve Amerikan Kanser Araştırma Enstitüsü, haftada 4 porsiyondan fazla krusifer grubu sebze tüketiminin, pankreas kanseri riskini %50 azaltabileceğini öne sürmektedir.
                          • Yapılan deneylerde; sülforafanın, pankreas hücrelerinde tümör büyümesini inhibe ettiği kaydedilmiştir.
                          • Yapılan bilimsel çalışmalar; krusifer grubu sebzelerin sık sık tüketilmesinin yanında, renkli birçok sebze ve meyvenin tüketilmesinin ve güneşe yeterli sure maruz kalmanın, kanser riskini azaltabileceğini göstermiştir.
                          Sülforafan’ın Sağlık Etkilerinden Yararlanabilmek İçin Nelere Dikkat Edilmeli?


                          Glukozinolatlardan en iyi şekilde verim sağlamak ve kayıpları en aza indirebilmek için; sebzelerin tazeyken tüketilmesi ve haşlama ya da uzun pişirme yöntemleri yerine, buharda pişirme ya da mikrodalgada pişirme yöntemleri uygulanması tavsiye edilmektedir. Ayrıca krusifer grubu sebzelerin bağırsak mikrobiyotasını* olumlu yönde etkileyen, yoğurt ve kefir gibi probiyotik kaynaklarla birlikte tüketilmesinin, mirosinaz enziminin aktifliği açısından olumlu etki yapabileceği düşünülmüştür.
                          • Sonuç olarak;

                          Krusifer grubu sebzelerin, kanser karşıtı özelliğinin olabileceği, kanserin başlamasını ya da gelişmesini engellemeye yardımcı etkilerinin olabileceği düşünülmektedir.

                          Beslenmemizde bütün makro ve mikro besin öğelerinden yeterli kadar bulunmalıdır. Çeşitli beslenme hem sağlığımızın korunmasında ve geliştirilmesinde hem de kanser riskini azaltmada önemli bir faktördür. SÖZLÜK

                          KAYNAKLAR


                          Amjad, A. I., Parikh, R. A., Appleman, L. J., Hahm, E.-R., Singh, K., & Singh, S. V. (2015). Broccoli-Derived Sulforaphane and Chemoprevention of Prostate Cancer: From Bench to Bedside. Curr Pharmacol Rep , 382-390.

                          Atwell, L. L., Beaver, L. M., Shannon, J., Williams, D. E., Dashwood, R. H., & Ho, E. (2015). Epigenetic Regulation by Sulforaphane: Opportunities for Breast and Prostate Canser Chemopreventon. Curr Pharmacol Rep , 102-111.

                          Çelik, F., & Köksal, G. (2013). Kanser ve Sülforafan. Beslenme ve Diyet Dergisi , 266-273.

                          Farag, M. A., & Motaal, A. A. (2010). Sulforaphane composition, cytotoxic and antioxidant activity of crucifer vegetables. Journal of Advanced Research , 65-70.

                          Herr, I., Lozanovski, V., Houben, P., Schemmer, P., & Büchler, M. H. (2013). Sulforaphane and related mustard oils in focus of cancer prevention and therapy. Wien Med Wochenschr , 80-88.

                          Li, Y., Zhang, T., Korkaya, H., Liu, S., Lee, H.-F., Newman, B., et al. (2010). Sulforaphane, a Dietary Component of Broccoli/Broccoli Sprouts, Inhibits Breast Cancer Stem Cells. Clinical Canser Research , 2580-2590.

                          Yorum yap


                          • #14
                            Brokoli'den İzotiyosiyanat, Sülforafan ve Özellikleri

                            Alena Vanduchova
                            ,
                            Pavel Anzenbacher
                            , ve
                            Eva Anzenbacherova
                            Çevrimiçi Yayınlanma: 23 Mart 2019https://doi.org/10.1089/jmf.2018.002

                            Soyut
                            Sülforafan, lahana, karnabahar ve karalahana gibi turpgillerden sebzelerde ve özellikle brokoli filizlerinde yüksek seviyelerde glukofafan olarak depolanmış halde bulunan bir izotiyosiyanattır. Glucoraphanin, onu sülforafan'a dönüştürmek için bitki enzimi mirosinazını gerektirir. Sülforafan, merkapturik asit yolu yoluyla metabolize olur, glutatyon ile konjuge olur ve daha fazla biyotransformasyona uğrayarak metabolitler verir. Sulforaphane kapsamlı bir şekilde araştırılmaktadır ve sağlığa faydaları nedeniyle tıpta ilgi görmektedir. Sülforafanın çeşitli kanser türlerine karşı koruma sağlayabileceği, ayrıca kardiyovasküler hastalık riskini azaltabileceği ve otizm ve osteoporozda yardımcı olabileceği gösterilmiştir. İncelememiz, sülforafanın ilginç özelliklerinin kısa bir özetini sunmaktadır. Her ikisi de in vitrove in vivo yöntemler/modeller ve klinik çalışmalardan bahsedilmiştir.

                            Sülforafanın Kimyasal Yapısı ve Metabolizması
                            Sülforafan , 4-metilsülfinilbutil izotiyosiyanat veya 1-izotiyosiyanat-4-metilsülfinilbutan ( Şekil 1 ) kimyasal bir yapıya sahiptir ve bitkilerde biyolojik olarak aktif olmayan öncü-glukorafanin şeklinde meydana gelen bir fitokimyasaldır ( Şekil 2 ). Bu öncü , yapılarında yerleşik bir şeker bileşenine (çoğunlukla d -glukoz) sahip olan fitokimyasallar-glukosinolatlar ( Şekil 3 )- grubuna aittir ve bunlar, mirosinaz adı verilen enzim tarafından hızla uygun izotiyosiyanata dönüştürülür.Bitkilerde en yaygın olarak bulunan diğer glukozinolatlar, glukorafanın (4-metilsülfinilbutil), glukobrasisin (3-indolmetil), sinigrin [2-propenil (allil)] ve progoitrin [(R)-2-hidroksi-3-butenil] hariçtir. Dönüşüm süreci, bitki dokularının ısırma, çiğneme, dilimleme ve diğer doku tahribatı yoluyla parçalanmasından sonra, enzim mirosinaz bitki dokularından salındığında gerçekleşir. 1-4 Yemek hazırlama sırasında (pişirme, buharda pişirme veya mikrodalga tedavisi sırasında) enzim mirosinaz yok edildiğinde, olası bir izotiyosiyanat kaynağı, bağırsak mikroflorası tarafından glukozinolatların mikrobiyal bozunmasıdır. Bununla birlikte, mikrofloranın hidrolizinin çok verimli olmadığı ve insanlarda çok çeşitli ve değişken olduğu bildirilmiştir. 5-8

                            Sebzelerdeki glukozinolatların içeriği
                            Glukozinolatlar, özellikle glukorafanin (sülforafan öncüsü), genç brokoli bitkilerinde ( Brassica oleracea var. Italica ) ve Brüksel lahanası ( Brassica oleracea var. gemmifera ) gibi diğer turpgillerden sebzelerde (diğer kaynaklarla karşılaştırıldığında) özellikle yüksek konsantrasyonlarda bulunur. lahana ( Brassica oleracea var. Capitata ). Yayınlanmış bir çalışmada, 9 glukorafanin içeriği değerlendirildi ve yazarlar, brokoli filizlerinden elde edilen ekstrakttaki glukorafaninin içeriğinin  taze ağırlığın gramı başına 16.6 μ mol olduğunu buldu. Buna karşılık, olgun brokoli özütü  , taze ağırlığın gramı başına 1.08 μ mol içeriyordu. 9 Genç brokoli filizlerindeki toplam glukozinolat miktarı, taze ağırlığın gramı başına 22,7  μ mol ve olgun brokoli için taze ağırlığın gramı başına 3,37  μ mol'dür. 100 gr olgun brokolide 50-100 mg glukozinolat bulunabilir. 1 , 9 , 10Isıl işlem sırasında toplam glukozinolat miktarı önemli ölçüde değişir. Taze genç brokoli filizleri, taze ağırlığın gramı başına 128 mg glukozinolat içerir, bunun aksine, beyazlatılmış brokoli sadece 92 mg, pişmiş brokoli 47 mg ve dondurulmuş brokoli taze ağırlığın gramı başına 45 mg içerir. 11

                            Pişirme brokolide glukozinolatların içeriğini etkiler
                            Pişirme ve haşlama, brokolideki glukozinolatların içeriğini önemli ölçüde etkiler ve ayrıca bitki dokusunda bulunan enzim mirosinaz tarafından oluşturulan ürünlerin içeriğini de etkiler. Bir in vitro deneyde, brokoli tedavisinin glukorafaninin sülforafana dönüşüm yüzdesini nasıl etkilediği araştırıldı. 12 Isıl işlem görmemiş ve liyofilize edilmiş brokolide öncüsü olan glukorafaninden oluşan sülforafanın yüzde miktarı %22.8'dir. Brokolinin buharda pişirilmesi (5 dakika) ve liyofilizasyonu, oluşan sülforafan miktarını %4.2'ye düşürürken, hafif ısıtma (60°C) in vitro sülforafan oluşumunu arttırır (%97.9). 12

                            sülforafan metabolizması
                            Sülforafan, glukuronid öncüsünün hidrolizinin tek ürünü değildir, yüksek bir yüzdesi, sülforafan üzerinde çalışılan etkileri artık olmayan bir nitrile dönüştürülür. Bazı brokoli çeşitlerinde epitiyospesifik proteinin (ESP) varlığı, glukozinolatların nitril ürünlere dönüşümünü arttırır. Ancak nitril ürünleri biyolojik olarak aktif değildir. Brokolide ESP'nin varlığının, glukozinolatların hidrolizi sırasında izotiyosiyanatlardan dokuz kat daha fazla inaktif nitril ürünleri üretmeye yol açtığı yakın zamanda yayınlandı. 13–15Enzim mirosinaz ve ESP farklı termal stabiliteye sahiptir. Hafif pişirmede (60–70°C), mirosinaz işlevini korurken ESP aktivitesinin azaldığı gösterilmiştir. Sonuç, biyolojik olarak aktif olmayan nitril ürünlerinin üretimi azalırken, eş zamanlı olarak izotiyosiyanatların oluşumu arttı. 13

                            Bununla birlikte, literatürde pişmiş brokoliden sülforafan biyoyararlanımının eksikliği ve dolayısıyla sağlık yararlarının beklenen eksikliği hakkında çok fazla bilgi bulunmaktadır. 6 , 7 , 16 , 17 Mirosinazın ticari olarak temin edilebilen dondurulmuş brokoli içinde sülforafan oluşumunu katalize etme yeteneğinin koşulları Dosz ve Jeffery'de değerlendirildi. 18 Brassica oleracea'da sülforafan oluşumunun meydana geldiği optimum pH ve sıcaklık sırasıyla 5 ile 6 ve 14°C ile 25°C arasındadır. 18

                            Glukosinolatların enzim mirosinaz tarafından dönüştürülmesinden sonra, genel olarak, izotiyosiyanatlar merkapturik asit yolu yoluyla metabolize edilir. İlk başta izotiyosiyanatlar, glutatyon transferaz (GST) katalizli bir reaksiyonda glutatyon (GSH) ile konjuge edilir. Bunu, sülforafan- N -asetilsistein (SFR-NAC) vermek üzere y -glutamiltranspeptidaz, sisteinilglisinaz ve N -asetiltransferaz tarafından katalize edilen ardışık bölünme reaksiyonları takip eder ( Şekil 4 ). İzotiyosiyanat sülforafan, glutatyon ile konjuge edilen merkapturik asit yolu yoluyla metabolize edilir ve birkaç metabolit veren daha fazla biyotransformasyona uğrar.

                            Sülforafan Tayini için Analitik Yöntemler
                            Yüksek performanslı sıvı kromatografi yöntemleri
                            Tohumlarda, bitki dokularında veya fonksiyonel gıdalarda sülforafan tayini için birçok yöntem yayınlanmıştır. Bu yöntemler çoğunlukla yüksek performanslı sıvı kromatografisi (HPLC) ile yapılan analize dayanmaktadır. 19–21 Çoğunlukla bitki dokularında, 19–25 insan plazmasında26 veya farede sülforafan tayini için (çok sayıda farklı dedektör kullanılarak) birçok HPLC yöntemi halihazırda yayınlanmıştır . 27 Literatür 28 , bu bileşikle tedavi edilen insan karaciğer hücrelerinde sülforafanın belirlenmesi için UV saptamalı bir HPLC yöntemini açıklar.

                            Son zamanlarda, izotiyosiyanatların veya glukozinolatların belirlenmesi için yöntemler geliştirilmiştir. Son zamanlarda, doğal olarak oluşan izotiyosiyanatların 22 belirlenmesi için kolonun 60°C'de ısıtılmasını içeren bir HPLC yöntemi önerildi ; ayrıca glukozinolatların ve karşılık gelen izotiyosiyanatların eş zamanlı tespiti için bir HPLC-elektrosprey iyonizasyon-tandem kütle spektrometrisi yöntemi yayınlandı. 24 İnsan idrarında sülforafan ve onun glukozinolat glukorafaninin tayini için tandem kütle spektrometrisine sahip bir ultra performanslı sıvı kromatografi yöntemi de kullanıldı. 25Farelerde sülforafan metabolizmasını ve doku dağılımını belirlemek için beş sülforafan metabolitinin tümünün tandem kütle spektrometrisine (LC-MS/MS) bağlı HPLC analizi de yapıldı.

                            Sülforafan ve metabolitlerinin en yüksek konsantrasyon seviyeleri ince bağırsak, prostat ve böbrekte bulundu. 27 Bununla birlikte, bu in vivo çalışma, bir sülfoksit olan sülforafanın ( Şekil 1 ) dokularda tiyoeter analoğu olan erusin 29 , 30'a indirgendiği gerçeğini yansıtmamaktadır ; bu nedenle, verilen dokularda elde edilen konsantrasyonlar doğru olamaz.

                            siklo yoğuşma
                            Siklokondenzasyon, idrar ve plazmadaki izotiyosiyanat eşdeğerlerinin veya sülforafan konjugatlarının (ditiyokarbamatlar) miktarının belirlenmesi için kullanılabilir. Bu spektroskopik yöntem, izotiyosiyanatların, visinal ditiol 1,2-benzenditiol varlığında 1,3-benzoditiyol-2-tiyon'a dönüştürülmesine dayanır; 1,3-benzoditiyol-2-tiyon, spektroskopik belirleme için oldukça uygun hassas özelliklere sahiptir. 31-33 Buna karşılık, herhangi bir reaktif izotiyosiyanat veya ditiyokarbamat aynı siklik ürünü oluşturduğundan, bu yöntem tek tek izotiyosiyanatlar veya ditiyokarbamat arasında ayrım yapamaz. 33

                            Sülforafanın Optik İzomerleri
                            Sülforafan, sülforafan olarak iki optik izomerde doğal olarak meydana gelir ve öncüsü glukofanin, asimetrik bir kükürt atomuna sahiptir. Brokoli ve Arabidopsis thaliana'dan izole edilen glukorafaninin saf bir epimer olduğu (NMR yöntemleriyle) ve sülfoksit grubunun R-konfigürasyonuna sahip olduğu bildirildi, bu da konfigürasyonun hidroliz ürünü R-sülforafan'da enzim mirosinaz tarafından tutulduğunu düşündürdü. 34

                            İlginç bir şekilde, sadece bir yayın, sülforafanın R- ve S-enantiyomerinin ayrılması ve belirlenmesine odaklanmıştır. Turpgillerden sebzelerden sülforafanın kiral kromatografisi Okada ve ark. , 35 S-sülforafanın R-enantiyomeri ile birlikte tüm brokoli numunelerinde tespit edilmiştir. Bununla birlikte, fizyolojik aktivitelerde sülforafanın enantiyomerleri arasındaki fark hakkında sadece birkaç çalışma rapor edilmiştir.

                            Sülforafanın R- ve S-enantiyomerinin farklı aktiviteler sergilediği daha önce yayınlanmıştır; R-sülforafan, sıçan karaciğeri ve akciğerindeki kanserojen detoksifiye edici enzim sistemlerinin S-izomerinden çok daha güçlü bir indükleyicidir. 36 Ayrıca sıçan karaciğer epoksit hidrolaz ve glukuronosil transferaz aktivitelerinin sülforafanın etkisiyle arttırıldığı bulunmuştur; Sülforafanın R-enantiyomeri, her iki aktiviteyi arttırmada S-enantiyomerinden daha etkiliydi. 37

                            Sülforafan enantiyomerlerinin insan karaciğer mikrozomlarındaki sitokrom P450'nin enzim aktiviteleri üzerindeki etkisi in vitro olarak Srovnalova ve ark. 38 ; sülforafanın sitokrom P450 3A4/5 ve 2D6'nın aktivitelerini etkilediği bulundu, ancak önleyici deneyler bu bileşiğin enantiyomerlerinin varlığını yansıtmadı. Bununla birlikte, potansiyel inhibitörün fizyolojik olarak ilgili konsantrasyonlarında enzimatik aktiviteler önemli ölçüde etkilenmediği için bu etkileşimlerin klinik olarak önemli olması olası değildir (sülforafan ve metabolitlerinin plazma konsantrasyonu 1 μ mol/L' yi geçmez  ). 26 , 39

                            Sülforafan Sağlık Faydaları
                            Sülforafan, turpgillerden sebzeler ve birçok diyet nutrasötikleri ile yaygın olarak ve yaygın olarak tüketilen düşük toksisiteye sahip bir diyet fitokimyasalıdır ve insanlara uygulanması genellikle iyi tolere edilir. 40–42 İzotiyosiyanat sülforafan, çeşitli in vivo patolojilerde ve ayrıca deneysel modeller üzerinde in vitro çalışmalarda koruyucu etkisi nedeniyle son birkaç yılda kapsamlı bir şekilde incelenmiştir . 4 , 43 , 44 Sülforafanın etki mekanizmasını anlamayı amaçlayan birçok çalışma yayınlandı. Sülforafan, oksidatif stres ve antioksidan kapasiteyi, nöroinflamasyonu ve otizmle ilişkili diğer birçok biyokimyasal anormalliği etkiler. 45, 46

                            Sülforafan otizm semptomlarını azaltır
                            Günlük oral sülforafan dozlarının, otizm spektrum bozukluğu olan hastaların (stereotipik davranış ve bozulmuş sosyal etkileşim ve iletişim ile karakterize edilen) davranışları üzerindeki faydalı etkileri açıklanmaktadır. Sülforafanın otizmin tedavisi üzerindeki etkisini test etme fikri, sülforafanın uygun özelliklerine dayanıyordu. 47

                            Otizmli çocuklar, kontrol çocukları ile karşılaştırıldığında, metiyonin döngüsü bileşiklerinin (metionin, S - adenosilmetiyonin (SAM), homosistein, sistatiyonin, sistein ve toplam GSH) plazma konsantrasyonunun taban çizgisini önemli ölçüde daha düşük ve S - adenosilhomosisteinin (SAH ) önemli ölçüde daha yüksek konsantrasyonlarına sahipti. ), adenosin ve oksitlenmiş GSH. SAM'ın SAH'a oranının önemli ölçüde düşük olması ve oksidatif stresin artması anlamına gelen, yani azaltılmış GSH'nin oksitlenmiş GSH'ye önemli ölçüde düşük redoks oranı anlamına gelen bozulmuş metilasyon kapasitesi, otizmli çocukların metabolik profili ile ilgilidir. Metilasyon kapasitesinin azalması ve oksidatif strese karşı direncin azalması, otizmin gelişimine ve klinik tezahürüne katkıda bulunabilir. 45

                            Çalışma 46'da , otizm patogenezinde bağışıklık aracılı mekanizmaların da yer alıp almadığı araştırıldı. Otistik hastalardan alınan beyin dokularını ve beyin omurilik sıvısını incelemek için immünositokimya, sitokin protein dizileri ve enzime bağlı immünosorbent deneyleri kullanıldı. Bu araştırma, serebral kortekste, beyaz cevherde ve özellikle otistik hastaların serebellumunda aktif bir nöroinflamatuar süreç göstermiştir.

                            Otizmle ilgili 47 çalışmanın özeti, sülforafan alan önemli ölçüde daha fazla sayıda katılımcının sosyal etkileşimde, anormal davranışta ve sözlü iletişimde bir gelişme gösterdiğiydi. Çalışma 48'de açıklanan bulgular , özellikle pozitif ateş etkisi öyküsü olan hastalarda, sülforafanın otizm spektrum bozukluklarının semptomlarını iyileştirebileceğine dair ön kanıtlar sağlamıştır. Çalışma 49'da açıklanan sonuç , sülforafan bakımından zengin brokoli filizlerinden elde edilen bir ekstrakt ile takviye tedavisinin şizofreni hastalarında bilişsel eksiklikleri iyileştirme potansiyeline sahip olduğunu göstermektedir. Antikanser ajan olarak sülforafan


                            Sülforafan, insan sağlığına faydalı bir madde olarak klinik uygulamada potansiyel olarak faydalı bir kemoprotektif ajan olarak tanımlanmıştır. Ayrıca sülforafanın deksametazonla indüklenen apoptoza karşı koruyucu etkileri olduğu gösterilmiş ve altta yatan moleküler mekanizmalar aydınlatılmıştır. 50 Sonuçlar, sülforafanın, MC3T3-E1 hücrelerinde deksametazon ile indüklenen büyüme baskılanmasını ve laktat dehidrojenaz salınımını etkili bir şekilde engelleyebileceğini göstermiştir. Diğer çalışmalarda, sülforafanın pankreas kanseri, 51 kolon kanseri, 52 lösemi, 53 ve prostat kanseri 54 dahil olmak üzere çeşitli kanser türlerine karşı koruma sağlayabileceği gösterilmiştir.; sülforafanın kanser önleme üzerindeki etkileri Gupta ve ark . 55

                            Sülforafan-ilaç etkileşimi
                            Buna karşılık, spektroskopik çalışmalar 38 , sülforafanın hem demirine doğrudan bağlanması gözlemlendiğinden, sülforafanın insan karaciğer mikrozomal sitokrom P450 enzimleri ile doğrudan etkileşimi olasılığının olduğunu göstermiştir. Diğer deneyler, sülforafanın insan karaciğer mikrozomlarındaki iki ana sitokrom P450 enzimini in vitro (3A4/5 ve 2D6), 38 , yani insanlarda ilaç metabolizmasının çeşitli önemli reaksiyonlarında yer alan enzimleri inhibe ettiğini göstermiştir. 56 İnsan diyetinde yaygın olarak bulunan bazı fitokimyasallar, sitokrom P450 gibi ilaç metabolize edici enzimler düzeyinde klinik olarak anlamlı ilaç etkileşimlerinden sorumlu olabilir; örneğin, olumlu sağlık yararları nedeniyle yaygın olarak tüketilen greyfurt suyu. Greyfurt suyu, sitokrom P450 3A4'ün (esas olarak ince bağırsakta) geri döndürülemez bir inhibitörü olduğu bilinen 57 furanokumarinler (6'-7'-dihidroksibergamottin olarak) içerir, 58 bu nedenle felodipin ve diğer yaygın olarak kullanılan ilaçların oral kullanılabilirliğinde artışa neden olur. . 59 Herhangi bir enzimatik ilaç metabolizması sisteminin olası modülasyonu, ilaçlar ve sülforafan arasında bir etkileşime neden olabilir. 60

                            Sülforafan ve furosemid, verapamil ve ketoprofen arasındaki etkileşim, ilaç etkinliğinin ve ayrıca çoklu ilaç direncinin değişmesine yol açabilir, çünkü bu etkileşimler hem ilaç metabolizmasında hem de taşımada yer alan sistemlerin aktivitesini değiştirir. Sulforafanın çalışılan ilaçlarla (verapamil, ketoprofen ve furosemid) antagonistik olarak etkileşime girdiği gösterilmiştir. Caco-2 kanser kolon hücrelerinin sülforafan ve seçilmiş ilaçlarla birlikte kuluçkadan sonra IC50 değerleri, tek başına sülforafanın IC50 değerinden yaklaşık üçte bir daha düşüktü (IC50 değerleri belirlendi : kültürdeki hücrelerin %50'sinin ölümüne neden olan konsantrasyonlar) . 60

                            Sülforafanın diğer sağlık yararları
                            Ek olarak, sülforafanın etkisi de osteoporoz semptomlarını iyileştirebilir. 50 Diyet izotiyosiyanat, osteoartritin in vitro ve in vivo modellerinde gösterildiği gibi hücrelerde kıkırdak yıkımını önleyebilir . Sülforafan, kondrositlerde NAD(P)H:kinon oksidoredüktaz 1 aktivitesini önemli ölçüde indüklemiştir ve matris metalloproteinaz-1 üretimini inhibe etmiştir; -3 ve -13 proinflamatuar sitokin ile uyarılan kondrositlerde. 61

                            Sülforafan ile tedavi edilen fareler, tip II kollajen ile uyarılan lenf nodu hücreleri ve dalak hücreleri tarafından proinflamatuar sitokinler interlökin-17, tümör nekroz faktörü α , interlökin-6 ve interferon- y üretiminde belirgin bir azalma göstermiştir . sinovyal hiperplazi. 62

                            İzotiyosiyanatlar ve sülforafan ile yapılan ilk insan çalışması, artan brokoli alımının eklemde izotiyosiyanat alımı ile birlikte eklemde değişikliklere yol açtığını göstermiştir, bu nedenle diyet sülforafanın osteoartrit üzerindeki etkisini belirlemek için dikkatle tasarlanmış bir klinik araştırmaya duyulan ihtiyacı desteklemektedir. 63 Sulforaphane ayrıca bir transkripsiyon faktörü nükleer faktör eritroid 2-ilişkili faktör 2 (Nrf2) aktivatörüdür; Nrf2, oksidatif ve elektrofilik saldırılara karşı hücresel savunmada çok önemli bir rol oynar. 64 , 65 Nrf2 (sülforafan) indüktörü, sülfidril (-SH) grupları ile reaksiyona girme kabiliyetine sahiptir, bu nedenle Nrf2, kükürt kimyasına bağlıdır. 65

                            Çözüm
                            İncelememiz, birçok insan patolojisinde sülforafanın koruyucu etkisinin kanıtlarını özetledi. Birkaç in vitro , in vivove klinik çalışmalar brokolide glukosinolat glukorafanın formunda bulunan izotiyosiyanat sülforafanın potansiyel olarak kanserin önlenmesine katkıda bulunabileceğini göstermiştir. Sülforafan, sitoprotektif, antioksidan ve antiinflamatuar özelliklerinden dolayı ilgi çekicidir. Ayrıca dokularda, ayrıca tohumlarda veya fonksiyonel gıdalarda sülforafanın tayini için, çoğunlukla HPLC ile analize dayanan analitik yöntemler de yayınlanmıştır. Brokolinin (veya diğer turpgillerden sebzelerin) pişirilmesi veya diğer ısıl işlemlerinin brokolideki glukozinolatların içeriğini önemli ölçüde etkilediği ve ayrıca bitki dokusunda bulunan enzim mirosinaz tarafından oluşturulan ürünlerin içeriğini de etkilediği bilinmektedir.

                            Diyetle alınan fitokimyasal sülforafan düşük toksisiteli olarak kabul edilir ve insanlara uygulanması iyi tolere edilir ve bu nedenle sülforafan klinik araştırmalar için uygun bir doğal madde ve gıda takviyelerinin popüler bileşenidir. Sülforafanın insan sağlığı üzerindeki yararlı etkilerini tam olarak anlamak için, dikkatle tasarlanmış klinik çalışmaların yanı sıra etki mekanizmasına ilişkin daha ileri çalışmalara ihtiyaç vardır.

                            Teşekkür
                            Laboratuvarlarımız, Çek Cumhuriyeti Hibe Ajansı'ndan GACR 303/12/G163 hibesi, Palacky Üniversitesi IGA UPOL_LF_2017_012 öğrenci hibesi ve hibe NPU: LO1304 tarafından desteklenmektedir.

                            Yorum yap


                            • #15
                              Kadmiyum-Karsinojenezde ROS, Nrf2 ve Otofajinin Rolleri ve Sülforafan ile Önlenmesi

                              Yuting Wang , a, b Ardhendu Kumar Mandal , b Young-OK Son , b Poyil Pratheeshkumar , b James TF Wise , b, c Lei Wang , b Zhuo Zhang , d Xianglin Shi , b, * ve Zhimin Chen a, *
                              Yazar bilgileri Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                              Bu makalenin yayıncının son düzenlenmiş versiyonu Toxicol Appl Pharmacol'da mevcuttur.
                              PMC'de yayınlanan makaleye atıfta bulunan diğer makalelere bakın.
                              Git: Soyut

                              Kadmiyuma çevresel ve mesleki maruziyet, akciğer kanseri de dahil olmak üzere çeşitli kanser riskini artırır. Kadmiyumun kanserojen mekanizması, önlenmesi de dahil olmak üzere araştırılmayı beklemektedir. Floresan ve elektron spin rezonans spin yakalama kullanan bu çalışma, ölümsüzleştirilmiş akciğer hücrelerinde (BEAS-2BR hücreleri), kadmiyuma maruz kalmanın reaktif oksijen türleri (ROS) oluşturduğunu göstermektedir. ROS üretimi yoluyla, kadmiyum, NF-κB'yi ve onun hedef proteini COX-2'yi aktive eden TNF-α'nın protein seviyesini artırarak inflamatuar bir mikro ortam yarattı. Ankrajdan bağımsız koloni oluşumu deneyi ile ölçüldüğü gibi, kadmiyum habis hücre transformasyonunu indüklemiştir. ROS'un antioksidanlar tarafından inhibisyonu, dönüşümü engelledi ve bu, ROS'un bu sürecin mekanizmasında önemli olduğunu gösterdi. Kadmiyum tarafından oluşturulan inflamatuar mikroçevre de dönüşüm mekanizmasına katkıda bulunabilir. Tandem floresan protein mCherry-GFP-LC3 yapısını kullanan bu çalışma, kadmiyumla dönüştürülmüş hücrelerin otofaji eksikliği özelliğine sahip olduğunu, bunun da otofagozomların birikmesine ve p62'nin artmasına neden olduğunu göstermektedir. Bu protein, pozitif geri besleme mekanizması yoluyla p62'yi de düzenleyen Nrf2'yi yukarı regüle etti. Kurucu Nrf2 aktivasyonu, aşağı akış anti-apoptotik proteinleri Bcl-2 ve Bcl-xl'yi artırarak apoptoz direncine neden oldu. Dönüştürülmemiş BEAS-2BR hücrelerinde, doğal bir bileşik olan sülforafan, otofajiyi arttırdı, Nrf2'yi aktive etti ve ROS'u azalttı. Kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde, sülforafan otofajiyi restore etti, Nrf2'yi azalttı ve apoptoz direncini azalttı. Dönüştürülmemiş hücrelerde, bu sülforafan, ROS'u ve muhtemelen habis hücre dönüşümünü azaltmak için indüklenebilir Nrf2'yi indükler. Kadmiyumla dönüştürülmüş hücrelerde, yapısal Nrf2'yi azalttı ve apoptoz direncini azalttı. Sülforafanın ikili rolü, bu doğal bileşiği kadmiyumun neden olduğu karsinojenezin önlenmesi için değerli bir ajan haline getirir.

                              Anahtar Kelimeler: Kadmiyum, otofaji eksikliği, sülforafan, karsinogenez
                              Git: GİRİŞ

                              Toksik bir ağır metal olan kadmiyum, bilinen bir insan kanserojeni olarak sınıflandırılır ( IARC, 1993 ). Kadmiyum maruziyetinin başlıca kaynakları gıda, sigara ve elektrokaplama, pigment ve piller gibi kadmiyumla ilgili endüstrilerdir ( Rafatati Rahimzadeh ve diğerleri , 2017 ). Kadmiyuma çevresel ve mesleki maruziyetler, akciğer kanseri de dahil olmak üzere çeşitli organların iltihaplanmasına ve kanserlerine neden olur ( Chen ve diğerleri ., 2015 ; Chen ve diğerleri ., 2016a ; Chen ve diğerleri ., 2016b ; Kim ve diğerleri ., 2017 ; Larsson ve diğerleri . al ., 2015). Kadmiyum kaynaklı karsinogenezin mekanizması henüz tanımlanmasa da, ROS, kadmiyum kaynaklı karsinogenezde önemli mekanizma olarak kabul edilir ( Wang ve ark ., 2016 ). ROS, makromoleküllere zarar verebilecek ve sonunda kanser dahil çeşitli hastalıklara katkıda bulunabilecek hücre içi oksidatif stresi indükler ( Wang ve diğerleri , 2016 ). Karsinojenez çok aşamalı bir süreç olsa da, metal kaynaklı karsinojenezin bilinen mekanizmalarını tartışırken kavramsal olarak iki aşamadan bahsediyoruz. Kadmiyum kaynaklı karsinojenezin ilk aşamasında (normal hücrelerden transforme hücrelere), ROS, kadmiyuma maruz kalan BEAS-2BR hücrelerinin malign hücre transformasyonunda önemli bir rol oynar ( Son ve ark .., 2012 ; Xu ve diğerleri , 2017 ). Antioksidan [katalaz (CAT) veya süperoksit dismutaz (SOD)] kullanılarak ROS'un inhibisyonu, kadmiyum kaynaklı karsinojenezi azaltabilir ( Son ve diğerleri , 2012 ). Metal karsinogenezinin ilk aşamasının mekanizması çok kapsamlı bir şekilde çalışılmış olmasına rağmen, metal karsinogenezinin ikinci aşamasının (morfolojik olarak dönüştürülmüş hücrelerin tümörigeneze ilerlemesi) mekanizması çok iyi araştırılmamıştır. Daha önceki çalışmamız ( Son ve ark ., 2014)) kadmiyumla dönüştürülmüş hücrelerde, p62 ve Nrf2'nin yapısal olarak aktive olduğunu ve bunların aşağı akış antioksidanlarının ve anti-apoptotik proteinlerinin yükseldiğini gösterdi. Nihai sonuçlar, ROS, apoptoz direnci ve tümör oluşumunda bir azalmadır ( Son ve diğerleri , 2014 ). Metal kaynaklı karsinojenezin ikinci aşamasında ROS oluşumunun azalması onkojeniktir, çünkü transforme hücrelerin hayatta kalması ve tümör oluşumu için uygun bir ortam sağlar ( Wang ve diğerleri , 2016 ; Xu ve diğerleri , 2017).). Bu nedenle, kadmiyum karsinojenezinin ilk aşamasında ROS oluşumunun azalması ve ikinci aşamada ROS oluşumunun yukarı regülasyonu, kadmiyum kaynaklı karsinojenezi inhibe etmek için bir strateji olabilir.

                              Kalıcı inflamasyon, bir dizi inflamatuar molekülü aktive ederek ve kanser büyümesi için uygun bir inflamatuar tümör mikro-ortamı yaratarak karsinojeneze ve tümör ilerlemesine katkıda bulunur ( Sui ve diğerleri , 2017 ). Proinflamatuar sitokinlerden biri olan tümör nekroz faktör alfa (TNF-α), kanser hücresi hayatta kalma ve proliferasyon yolunu aktive eder, tümörün inflamatuar hücre infiltrasyonunu tetikler ve anjiyogenezi ve tümör hücresi göçünü ve invazyonunu destekler (Balkwill, 2010). TNF-α, karsinogenezde önemli olan NF-κB (aktifleştirilmiş B hücrelerinin nükleer faktör kappa-hafif zincir güçlendiricisi) yolunu aktive eder ( Wu ve Zhou, 2010 ).). Siklooksijenaz-2'nin (COX-2) aktivasyonu, erken evre tümörijenez için önemli olan inflamatuar bir mikro-ortam oluşturur ( Echizen ve diğerleri , 2018 ). Kadmiyum, kanserin başlaması ve ilerlemesinde rol oynadığı bilinen iltihabı indükleyebilmesine rağmen ( Kim ve diğerleri, 2017 ; Olszowski ve diğerleri, 2012 ; Phuagkhaopong ve diğerleri, 2017 ). Kadmiyum kaynaklı karsinogenezde inflamasyonun rolü henüz belirlenmemiştir.

                              Otofajinin metal karsinogenez mekanizmasındaki rolü giderek daha fazla tanınmaktadır. Otofaji kendi kendini parçalayan bir süreçtir ve proteinlerin çıkarılmasında, hasarlı organellerin temizlenmesinde ve hücre içi patojenlerin ortadan kaldırılmasında temizlik rolü oynar ( Glick ve diğerleri , 2010 ). Hücre içi homeostazın korunmasında anahtar bir role sahip olan otofaji, karsinojenez dahil olmak üzere sağlıklı hücreleri etkileyebilecek çeşitli dejeneratif süreçlere karşı bir bariyer oluşturur ( Chen ve Karantza, 2011 ; Levine ve Klionsky, 2004 ). Önceki çalışmalarımız, otofajinin, dönüştürülmemiş BEAS-2BR hücrelerinde mitokondriyal ciroyu kolaylaştırarak arsenik kaynaklı ROS oluşumunu inhibe ettiğini gösterdi ( Zhang ve diğerleri , 2012).). Böylece otofaji, anti-onkojenik etkiler gösterebilir. Otofaji işlemi sırasında, sitozolik substratlar çift membranlı veziküllerde veya otofagozomda asimile edilir ve daha sonra parçalanmak ve otolizozomda (otofagozom ve lizozomun füzyon ürünü) geri dönüştürülmek üzere lizozoma aktarılır ( Nakahira ve diğerleri , 2014 ). Kadmiyum tedavisi, dönüştürülmemiş BEAS-2BR hücrelerinde otofajiyi artırırken, kadmiyumla dönüştürülmüş hücreler, otofajinin tamamlanmasını önlemek için otofagozomlar ve lizozomlar arasındaki füzyonun bir blokajı olan otofajiden yoksundur ( Son ve diğerleri , 2014 ). Otofaji yetkin hücrelerde, p62, otolizozomlar tarafından p62 ve her yerde bulunan protein agregatlarının bozulmasını kolaylaştırmak için doğrudan LC3'e bağlanır (Pankiv ve diğerleri , 2007 ). Otofaji eksikliği hücrelerinde, hücrelerin p62'yi çıkaramaması, onkojenik olan p62'nin birikmesine neden olur ( Son ve diğerleri , 2014 ). Bu nedenle, kadmiyumla dönüştürülmüş hücrelerde otofaji eksikliğinin araştırılması, kadmiyum karsinogenezinin ikinci aşamasının mekanizmasını anlamak için önemli bilgiler sağlayacaktır.

                              Kadmiyumla transforme edilmiş hücrelerde, otofaji eksikliği nedeniyle p62'nin yüksek ekspresyonu, p62'nin, Nrf2'nin (nükleer faktör eritroid 2-ilişkili faktör) inhibitörü olan Keap 1'e (kelch benzeri ECH-ilişkili protein 1) bağlanmasına neden olur ve yapısal aktivasyona yol açar. Nrf2'nin. Yapısal olarak aktive edilmiş Nrf2, süperoksit dismutaz, katalaz ve Bcl2 ve Bcl-xl gibi anti-apoptotik proteinler gibi Nrf2 aşağı akış proteinlerinin promotör bölgelerindeki antioksidan yanıt elementlerine (ARE) bağlandığı sitozolden çekirdeğe taşınır. Nihai sonuçlar, ROS'ta azalma, apoptoz direncinin gelişmesi ve kadmiyumla dönüştürülmüş hücrelerin tümörijenezi için uygun bir ortamın yaratılmasıdır ( Son ve diğerleri , 2014).). Ek olarak, Nrf2 ayrıca p62'yi yukarı regüle eder ve doğrudan p62'nin ARE bölgesine bağlanarak pozitif bir geri bildirime sahiptir ( Jain ve diğerleri , 2010 ). Nrf2'nin metal kaynaklı kanserojenezde iki ucu keskin bir kılıç görevi görmesi muhtemeldir. Metal karsinojenezinin ilk aşamasında, Nrf2'nin antioksidan özelliği, hücreleri malign transformasyondan korumak için ROS'u azaltır. Metal karsinojenezinin ikinci aşamasında, Nrf2'nin yapısal aktivasyonu, ROS oluşumunda azalmaya ve apoptoz direncinin kazanılmasına yol açarak, dönüştürülmüş hücrelerin hayatta kalması ve tümörijenezi için uygun bir ortam sağlar ( Xu ve diğerleri , 2017 ).

                              Brokoli gibi turpgillerden oluşan sebzeler tarafından üretilen doğal bir diyet izotiyosiyanat olan sülforafan (SFN), çok güçlü bir anti-kanser, antioksidan ve anti-inflamatuar aktiviteler sergiler ( Brandenburg ve diğerleri , 2010 ; Sestili ve Fimognari, 2015 ). Güvenlik, verimlilik ve uygulanabilirlik nedeniyle biyoaktif fitokimyasallar içeren gıdalar kansere karşı kemoprevensiyon stratejilerinin unsurları olarak önemli bir ilgi görmektedir ( Yang ve diğerleri , 2016a ). Önceki çalışmalar, sülforafanın farklı hücrelerde kadmiyum kaynaklı toksik etkileri azalttığını göstermektedir ( Alkharashi ve diğerleri , 2017 ; Alkharashi ve diğerleri , 2018 ;Yang ve diğerleri , 2016b ). Nrf2 sinyallemesinin doğal olarak oluşan güçlü indükleyicileri olarak sülforafan, sitoprotektif özelliğini Nrf2 yolu aracılığıyla sergiler ( Yang ve diğerleri , 2016a ). Kadmiyum karsinogenezinin ilk aşamasında Nrf2 anti-onkojenik olduğundan, Nrf2'nin sülforafan tarafından uyarılmasının kadmiyum tarafından üretilen ROS'u azalttığını ve bunun BEAS-2BR hücrelerinin kadmiyum kaynaklı malign transformasyonunun inhibisyonuna yol açtığını varsaydık. Kadmiyum karsinogenezinin ikinci aşamasında, Nrf2, p62 birikimi yoluyla yapısal olarak aktive edilir ve otofaji eksikliği nedeniyle indüklenebilirliğini kaybederek apoptoz direncine ve kadmiyumla dönüştürülmüş hücrelerin tümörijenezine yol açar. Önceki çalışmalar ayrıca sülforafanın bazı hücrelerde otofaji akışını arttırdığını bildirmiştir (Herman-Antosiewicz ve diğerleri , 2006 ; Lee ve diğerleri , 2014 ). Bu nedenle, sülforafanın normal hücrelerde ROS'u azaltmak ve habis hücre dönüşümünü azaltmak için indüklenebilir Nrf2'yi aktive etmesi ve kadmiyumla transforme edilmiş hücrelerde sülforafanın otofaji yeterliliğini geri kazanması, p62/Nrf2'nin azalmasına, apoptoz direncine ve tümör oluşumuna yol açması çok muhtemeldir. kadmiyumla dönüştürülmüş hücreler.

                              Git: MALZEMELER VE YÖNTEMLER

                              Kimyasallar ve kültür gereçleri

                              Aksi belirtilmedikçe, tüm kimyasallar ve kültür kapları sırasıyla Sigma Chemical Co.'dan (St Louis, Mo) ve Falcon Labware'den (Bectone-Dickinson, Franklin Lakes, NJ) satın alındı. Dulbecco'nun Modifiye Kartal Ortamı (DMEM), fetal sığır serumu (FBS) ve antibiyotik-antimikotik, Gibco Company'den (Gibco BRL, NY) satın alındı. Hücre hatları ve hücre kültürü

                              İnsan bronşiyal epitel hücre çizgisi (BEAS-2BR hücreleri), Amerikan Tipi Kültür Koleksiyonundan elde edildi ve kadmiyumla transforme edilmiş hücreler, daha önce tarif edildiği gibi üretildi ( Son ve diğerleri , 2014 ). Kadmiyumla transforme edilmiş hücreler ve bunların pasaj uyumlu transforme edilmemiş BEAS-2BR hücreleri, %10 fetal sığır serumu ve %1 antibiyotik-antimikotik ile desteklenmiş DMEM'de tutuldu. Serum ile büyütüldüklerinde, BEAS-2B hücreleri seruma dirençli hale gelir ve farklılaşma yeteneklerini kaybederler, bu nedenle, bir serum sisteminde büyüdüklerinde, seruma dirençli BEAS-2B hücreleri olduklarını belirtmek için bunlara BEAS-2BR hücreleri olarak değiniriz ( Ke ve ark . ., 1988 ). Plazmitler, shRNA ve transfeksiyon

                              Katalaz, SOD1 ve SOD2'nin aşırı ekspresyonu, daha önce tarif edildiği gibi yapıldı ( Son ve diğerleri , 2012 ). Nrf2 ve p62 shRNA, Origene'den (Rockville, MD) satın alındı. Transfeksiyonlar, üreticinin protokolüne göre Lipofectamine™ 2000 (Invitrogen) kullanılarak yapıldı. Western blot analizi

                              Western blot analizi, daha önce tarif edildiği gibi yapıldı ( Son ve diğerleri , 2010a). P-aktin için spesifik monoklonal antikorlar, Sigma-Aldrich'ten (St. Louis, MO) satın alındı. NF-KB ve Ref-1'e özgü antikorlar, Santa Cruz, CA'dan satın alınmıştır). COX-2, TNF-a, Bcl-2, PARP, C-Caspase 3, GAPDH, p62 ve Nrf2'ye karşı antikorlar Cell signaling Technology'den (Danvers, MA) satın alındı. İkincil antikorlar ve güçlendirilmiş kemilüminesans substratı, Pierce Biotechnology'den (Waltham, MA) satın alındı. Lekeler, Hyperfilm'e (Amersham Bioscience, Piscataway, NJ) maruz bırakıldı. Sitoplazmik ve nükleer protein üretmek için kadmiyumla muamele edilmiş hücreler soğuk PBS ile yıkandı ve hücreler 1 ml PBS içinde kazındı. Daha sonra hücreler, 0.4 ml lizis tamponu (10 mM Hepes, 10 mM KCI, 0.1 mM EDTA, 0.1 mM EGTA) içinde süspanse edildi ve 15 dakika boyunca buz üzerinde lize edildi. Daha sonra 12,5 µl %10 NF-40 eklendi, 10 sn vortekslendi, ve 4°C'de maksimum hızda 1 dakika döndürüldü. Süpernatan, sitoplazma proteinidir. 40 ul ekstraksiyon tamponu (20 mM Hepes (PH 7.9), 0.4M KCl, 1 mM EDTA ve 1 mM EGTA) ilave edildi ve daha sonra 4°C'de maksimum hızda 5 dakika döndürüldü. Süpernatant nükleer proteindir. Lizis tamponu ve ekstraksiyon tamponu için, kullanımdan önce proteaz inhibitör kokteyli ilave edildi. Hücre içi ROS belirleme

                              H2 DCFDA olarak da bilinen 2 ',7'–diklorofloresin diasetat (DCFDA), ROS için kullanılan spesifik boyadır. BEAS-2BR hücreleri, hücrelere 24 saat boyunca farklı konsantrasyonlarda kadmiyum ve katalaz (1000 U/ml) uygulanmadan önce 60 mm'lik kültür tabaklarına ekildi. Son olarak hücreler, 30 dakika boyunca 5 uM'lik bir nihai konsantrasyonda DCFDA'ya maruz bırakıldı ve akış sitometrik analizi için işlendi. Elektron spin rezonansının (ESR) tüm ölçümleri, daha önce tarif edildiği gibi Bruker EMS spektrometresi (Bruker Instruments) ve bir düz hücre tertibatı kullanılarak yapıldı ( Son ve diğerleri , 2010b ). GFP-LC3 ve mCherry-EGFP-LC3 punkta oluşumu tahlilleri

                              Kısaca daha önce tarif edildiği gibi ( Son ve diğerleri , 2011 ), kadmiyumla transforme edilmiş hücreler ve transforme edilmemiş BEAS-2BR hücreleri, GFP-LC3 veya mCherry-EGFP-LC3 plazmitleri (katalog no. 24920 ve 22418, Addgene, Cambridge, MA). Transfekte edilmiş hücreler, 6 oyuklu plakalara (0.2 x 10⁶ hücre/lamel) yerleştirilmiş lamellerin üzerine ekildi . Floresan pozitif hücreler, bir floresan mikroskobu (Carl Zeiss, Almanya) kullanılarak sayıldı. istatistiksel analiz

                              Tüm veriler ortalama ± standart hata (SE) olarak ifade edildi. Çoklu karşılaştırmalar için SPSS ver.10.0 yazılımı kullanılarak tek yönlü varyans analizi (ANOVA) kullanıldı. P<0.05 değeri istatistiksel olarak anlamlı kabul edildi.

                              Git: SONUÇLAR

                              BEAS-2BR hücrelerinde Cd(II) maruziyetinin neden olduğu ROS ve antioksidanlar inhibitör etkiler sergiledi

                              ROS üretimi, hücre geçirgen reaktif 2',7'-diklorofloresin diasetat (DCFDA, H2 DCFDA olarak da bilinir) kullanılarak akış sitometrisi ile ölçülmüştür (1A). DCFDA, hücre içindeki ROS aktivitesini ölçen florojenik bir boyadır. Sonuçlar, BEAS-2BR hücreleri kadmiyum ile muamele edildiğinde, floresan tepe noktasının sağa kaydırıldığını ve bunun da ROS oluşumunun arttığını gösterdiğini gösterdi (1A). Gelişmiş ROS üretimi, kadmiyum konsantrasyonuna bağlıdır (1A). H 2 O 2'ye karşı spesifik bir antioksidan olan katalaz, kadmiyum ile muamele edilmiş BEAS-2BR hücrelerine eklendiğinde ROS üretimi azaldı (1A). Ayrıca, kadmiyumla muamele edilmiş BEAS-2BR hücrelerinde oksijen radikali seviyelerini ve daha önce tarif edilen metoda göre ESR spin yakalama kullanarak bir antioksidan tarafından olası inhibisyonu ölçtük ( Shi ve diğerleri , 1994a ; Shi ve diğerleri , 1994b ). Bu yöntem, daha sonra ESR kullanılarak incelenebilen, nispeten uzun ömürlü bir serbest radikal ürün (spin eklentisi) oluşturmak için kısa ömürlü bir radikalin bir paramanyetik bileşik (döndürme kapanı) ile ekleme tipi reaksiyonunu içerir. ESR sinyalinin yoğunluğu, yakalanan kısa ömürlü radikallerin miktarını ölçmek için kullanılır ve spin eklentisinin aşırı ince eşleşmeleri genellikle orijinal yakalanan radikallerin karakteristiğidir. Da gösterildiği gibi1B, işlenmemiş BEAS-2BR hücrelerinde üretilen ESR sinyal yoğunluğu düşüktür. Kadmiyum tedavisi, ROS oluşumunun bir kanıtı olan tipik bir 1:2:2:1 dörtlü ESR sinyali üretti. Sülforafan ilavesi, kadmiyum kaynaklı oksijen radikallerini azaltmıştır. Bu sonuçlar, kadmiyum maruziyetinin BEAS-2BR hücrelerinde ROS oluşumunu indüklediğini ve antioksidanlar, katalaz ve sülforafanın inhibe edici etkiler sergilediğini ortaya koydu.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f1.jpg
                              Ayrı bir pencerede aç
                              1
                              BEAS-2BR hücrelerinin kadmiyum kaynaklı ROS ve antioksidanlara maruz kalması üretimi azalttı
                              (A) Belirtilen kadmiyum konsantrasyonlarında kadmiyuma maruz bırakılan BEAS-2BR hücrelerinden ROS seviyeleri, akış sitometrisi kullanılarak ölçüldü. (B) ESR spektrumları, farklı deney koşullarında kadmiyuma maruz bırakılan BEAS-2BR hücrelerinden kaydedildi. Kullanılan reaktiflerin konsantrasyonları şunlardır: 0 ve 10 uM CdCl2 , 10 uM sülforafan (SFN) ile 10 uM CdCl2 . Spektrometre ayarları şunlardı: alıcı kazancı, 1.25×10⁵; modülasyon genliği, 1.25 G; tarama süresi 200 s; alan 3480 + 50 G; ve zaman sabiti, 1.5 saniye. 5,5-dimetil-1-pirolin N-oksit (DMPO), bir spin (radikal) tutucu ajan olarak kullanıldı. BEAS-2BR hücrelerinin maruz kalması iltihabı arttırdı ve ROS önemli bir rol oynadı

                              Kadmiyum kaynaklı inflamasyonu ve bu süreçte ROS'un rolünü araştırmak için BEAS-2BR hücrelerini kadmiyum (10 µM) ile 24 saat boyunca antioksidanlarla ve antioksidanlar olmadan tedavi ettik. Beklendiği gibi, kadmiyumla muamele edilmiş BEAS-2BR hücrelerinde artan TNF-a ekspresyonu gözlendi (İncir. 2). Birlikte tedavi olarak katalaz eklendiğinde, TNF-α ekspresyonu azaldı (İncir. 2), ROS'un kadmiyum kaynaklı TNF-a indüksiyonunda önemli bir rol oynadığını gösterir. TNF-α, NF-kB'yi yukarı regüle etme özelliğine sahip olduğundan, NF-κB transkripsiyon kompleksinin bir alt birimi olan NF-κB/p65'in protein seviyesini ölçerek NF-KB aktivasyonunu araştırdık ve bu, inflamatuar ve bağışıklıkta çok önemli bir rol oynar. tepkiler. BEAS-2BR hücreleri, farklı zamanlarda farklı kadmiyum konsantrasyonlarına maruz bırakıldı. NF-KB/P65 aktivasyonu gözlendi (Şekil 3A). TNF-a'yı inhibe etmek için TNF-a shRNA kullanarak kadmiyum kaynaklı NF-KB aktivasyonunda TNF-a'nın pozitif rolünü araştırdık. Da gösterildiği gibiŞekil 3B, TNF-α'nın inhibisyonu NF-KB aktivasyonunu azalttı, bu da TNF-α'nın NF-KB'nin yukarı akışı olduğunu gösterdi. COX-2, NF-κB aşağı akış proteini olduğundan, kadmiyumun BEAS-2BR hücrelerine maruz kalmasının bu proteini artıracağını umduk. BEAS-2BR hücreleri, farklı sürelerde (12, 24 ve 48 saat) farklı konsantrasyonlarda (0, 5 ve 20 uM) kadmiyum ile muamele edildi. Sonuçlar, COX-2 protein seviyesinin doza ve zamana bağlı bir şekilde arttığını gösterdi (4). Genel olarak, sonuçlar BEAS-2BR hücrelerinin kadmiyuma maruz kalmasının inflamatuar proteinleri, TNF-a, COX-2 ve NF-KB'yi arttırdığını ve ROS'un bu süreçlerde önemli bir rol oynadığını göstermektedir.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f2.jpg
                              Ayrı bir pencerede aç
                              İncir. 2
                              BEAS-2BR hücrelerinin kadmiyuma maruz kalması TNF-α ekspresyonunu arttırdı ve katalaz onu inhibe etti
                              Katalaz ekspresyonuna sahip BEAS-2BR hücreleri veya BEAS-2BR hücreleri, 24 saat boyunca 5 uM CdCl2 ile inkübe edildi. Bütün hücre lizatları izole edildi. TNF-a'nın protein seviyeleri, immünoblotlama kullanılarak analiz edildi.

                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f3.jpg
                              Ayrı bir pencerede aç
                              Şekil 3
                              BEAS-2BR hücrelerinin kadmiyuma maruz kalması TNFa'ya bağımlı NF-kB aktivasyonuna neden oldu
                              (A) BEAS-2BR hücreleri, farklı süreler boyunca farklı konsantrasyonlarda kadmiyuma maruz bırakıldı. Hücreler toplandı ve nükleer protein izole edildi. Nükleer NF-kB/p65 ve Ref-1 ekspresyonları immünoblotlama ile incelendi. (B) BEAS-2BR hücreleri, kontrol karıştırma ve TNFa shRNA ile transfekte edildi ve 48 saat boyunca 20 uM CdCl2'ye maruz bırakıldı. Tüm hücre lizatları toplandı ve NF-kB/p65 ve β-aktin ekspresyonu immünoblotlama ile incelendi.

                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f4.jpg
                              Ayrı bir pencerede aç
                              4
                              BEAS-2BR hücrelerinin kadmiyuma maruz kalması COX-2 ekspresyonunu arttırdı
                              BEAS-2BR hücreleri, farklı sürelerde farklı konsantrasyonlarda kadmiyuma maruz bırakıldı. Hücreler toplandı ve tam protein izole edildi. COX-2'nin ifadeleri immünoblotlama ile incelendi. Kadmiyum, BEAS-2BR'nin ROS'a bağlı malign transformasyonuna neden oldu

                              BEAS-2BR hücrelerinin 2 uM kadmiyuma maruz bırakılmasından 5 ay sonra ankrajdan bağımsız bir koloni oluşumu deneyi yapıldı. Kadmiyum ile muamele edilmiş BEAS-2BR hücrelerinin boyutu ve koloni sayısı arttı (Şekil 5). ROS'un kadmiyum kaynaklı malign transformasyona, katalaz (CAT, H 2 O 2'ye karşı antioksidan ), süperoksit dismutaz 1 (SOD1, O 2'ye karşı antioksidan • ) ve süperoksit dismutaz ekspresyonuna sahip transforme edilmemiş BEAS-2BR hücrelerine dahil olup olmadığını araştırmak için 2 (SOD2, O 2'ye karşı antioksidan •− ) belirlendi. Yumuşak agar tahlili, kadmiyum (2 uM) ile muamele edilmiş BEAS-2BR hücrelerine kıyasla antioksidan enzimleri (CAT, SOD1 ve SOD2) aşırı ifade eden BEAS-2BR hücrelerinde koloni oluşumunun önemli ölçüde inhibe edildiğini gösterir (Şekil 5). Bu antioksidanların aşırı ekspresyonu, kadmiyum kaynaklı ankrajdan bağımsız koloni oluşumunu inhibe etti ve bu, ROS'un kadmiyum kaynaklı hücre transformasyonunda önemli olduğunu gösterdi.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f5.jpg
                              Ayrı bir pencerede aç
                              Şekil 5
                              Antioksidan enzimlerin aşırı ekspresyonu ile kadmiyum kaynaklı hücre transformasyonunun inhibisyonu
                              Katalaz (CAT), süperoksit dismutaz 1 (SOD1) veya süperoksit dismutaz (SOD2) aşırı ekspresyonuna sahip BEAS-2BR hücreleri veya BEAS-2BR hücreleri, 2 uM CdCl2'ye maruz bırakıldı . Her 3 günde bir taze ortam eklendi. Hücre transformasyonu (yumuşak agar) tahlili, önceki çalışmalarımızda tarif edildiği gibi yapıldı ( Son ve diğerleri , 2012 ). Ankrajdan bağımsız koloni oluşumu, gece boyunca 1 mg/mL iyodonitrotetrazolyum menekşesi ile boyandı. Kadmiyumla dönüştürülmüş hücreler, otofaji eksikliği özelliğine sahiptir ve sülforafan, dönüştürülmemiş hücrelerde otofajiyi artırabildi ve kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde apoptozu geri yükleyebildi.

                              Dönüştürülmemiş ve kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde sülforafanın kadmiyum kaynaklı otofaji üzerindeki etkisini test etmek için tandem floresan proteini mCherry-GFP-LC3 yapısı dönüştürülmemiş BEAS-2BR hücrelerine ve kadmiyumla dönüştürülmüş hücrelere transfekte edildi. Da gösterildiği gibiŞekil 6A, otofagozom biriktiğinde, hem kırmızı hem de yeşil LC-3 punkta gözlendi. Bu iki görüntünün birleştirilmesi, otofagozomların lizozomlarla kaynaşarak otolizozomları oluşturmadığını ve otofajinin tamamlanmadığını gösteren sarı bir renk üretir. Füzyon meydana geldiğinde ve otolizozomlar üretildiğinde ve yeşil floresan çözüldüğünde ve kırmızı renk muhafaza edildiğinde ve daha sonra birleştirilmiş görüntü rengi sarı değil kırmızı bir gölge olur.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f6.jpg
                              Ayrı bir pencerede aç
                              Şekil 6
                              Sülforafan (SFN), dönüştürülmemiş ve Cd(II) ile dönüştürülmüş hücrelerde Cd(II) kaynaklı otofajiyi arttırdı
                              (A) Otofagozomların ve otolizozomların tespitinin şematik gösterimi. mCherry-GFP-LC3-PE muhabiri, fagoforlarla (izolasyon membranları olarak da adlandırılır) ve otofagozomlarla (PE, fosfatidiletanolamini belirtir) birleştiğinde kırmızı ve yeşildir. Otolizozomlar oluşturmak için lizozomlarla füzyondan sonra, GFP sinyali asidik koşul tarafından söndürülür. (B) Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde ve Cd(II) ile dönüştürülmüş BEAS-2BR hücrelerinde Cd(II) kaynaklı otofajiyi arttırır. Geçiş uyumlu dönüştürülmemiş hücreler (BEAS-2BR) (solda) ve Cd(II) ile dönüştürülmüş hücreler (BEAS-2B-Cd) (sağda), mCherry-EGFP-LC3 yapısı ile transfekte edildi. Hücreler, 24 saat boyunca SFN ile birlikte Cd(II), sülforafan (SFN) veya Cd(II) ile işlendi. Görüntüler floresan mikroskobu kullanılarak yakalandı.


                              Dönüştürülmemiş BEAS-2BR, kadmiyum ile işlendiğinde, kırmızı ve yeşil LC-3 punkta'da önemli artışlar gözlendi ve birleştirilmiş görüntü rengi, dönüştürülmemiş BEAS-2BR hücrelerinde kadmiyum kaynaklı otofajinin ve otofajinin tamamlandığını gösteren kırmızı bir gölgeydi (Şekil 6B). Sülforafanın kendisi, BEAS-2BR hücrelerinde zayıf fakat gözlemlenebilir otofajiye neden oldu. Dönüştürülmemiş BEAS-2BR hücreleri kadmiyum ve sülforafan ile birlikte işlendiğinde, hem kırmızı hem de yeşil LC-3 punkta daha yüksek yoğunluklara sahipti ve görüntüler birleştirildiğinde kırmızı bir renk vardı (Şekil 6B), sülforafanın BEAS-2BR hücrelerinin kadmiyum kaynaklı otofajisini arttırdığını gösterir. Kadmiyumla dönüştürülmüş BEAS-2BR hücreleri, kadmiyum ile işlendiğinde, hem kırmızı hem de yeşil LC-3 punkta gözlendi. Birleştirilmiş görüntü kırmızıdan ziyade sarı bir tonla renklendirilir, bu da otofagozomun üretildiğini ve otolizozomlar oluşturmak için lizozomla kaynaşmadıklarını gösterir, bu da kadmiyumla dönüştürülmüş hücrelerin bir otofaji eksikliği özelliğine sahip olduğunu gösterir (Şekil 6C). Ek olarak, tek başına sülforafan tedavisi hem kırmızı hem de yeşil LC-3 punktadaki yoğunlukları arttırdı ve birleştirilmiş görüntü rengi kırmızıydı. Bu sonuçlar, sülforafanın kadmiyum kaynaklı transforme hücrelerin otofajisini artırabildiğini göstermektedir (Şekil 6C). Kadmiyumla dönüştürülmüş hücrelerin sülforafan ile birlikte işlenmesi, otofajiyi daha da arttırdı. Özetle, sonuçlar sülforafanın kadmiyum kaynaklı otofajiyi artırabildiğini ve kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinin otofaji eksikliği özelliğine sahip olduğunu ve sülforafanın kadmiyumla dönüştürülmüş hücrelerin otofaji eksikliğini geri yükleyebileceğini göstermektedir. p62 ve Nrf2, kadmiyumla dönüştürülmüş hücrelerde yapısal olarak yukarı regüle edildi

                              Önceki bölümdeki sonuçlar, kadmiyumla transforme edilmiş BEAS-2BR hücrelerinin, otofagozom birikimi ile otofaji eksikliği özelliğine sahip olduğunu göstermiştir. Yüksek otofagozom seviyesi, artan bir p62 seviyesini gösterdi. p62 ve Nrf2'nin bazal ekspresyonu, western blot analizi ile dönüştürülmemiş BEAS-2BR hücrelerinde ve kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde ölçülmüştür. (Şekil 7A). Sonuçlar, p62 ve Nrf2'nin kadmiyumla dönüştürülmüş hücrelerde yapısal olarak aktive olduğunu gösterdi. p62 ve Nrf2 arasındaki ilişki için, son çalışmaların p62 aşırı ekspresyonunu, p62'nin Nrf2 aktivasyonunun negatif bir düzenleyicisi olan Keap1'e bağlanması yoluyla Nrf2 aktivasyonuna bağladığını kaydettik. Kadmiyumla dönüştürülmüş hücrelerde otofaji eksikliğinin p62'yi artırması beklenmektedir (Şekil 7A) ve p62, Keap1'e bağlanır ve böylece Nrf2'yi aktive eder. Sonuçlarımız (7B), p62'nin shRNA tarafından yıkılmasının Cd(II)-dönüştürülmüş hücrelerde Nrf2 seviyesini azalttığını gösterdi (7B), p62'nin Nrf2'nin pozitif bir düzenleyicisi olduğunu gösterir. Nrf2'nin inhibisyonu da p62 seviyelerini düşürdü, bu da p62'nin Nrf2 ile pozitif bir geri besleme ilişkisine sahip olduğunu gösterdi. p62 gen promotöründe, bir antioksidan yanıt elemanı (ARE) bölgesi vardır. Nrf2'nin, p62'nin gen promotorundaki ARE bölgesine bağlanma yoluyla p62'yi yukarı regüle etmesi muhtemeldir. Genel olarak, yukarıdaki sonuçlar, Nrf2'yi yukarı regüle eden ve Nrf2'yi yukarı regüle eden kadmiyumla dönüştürülmüş hücrelerde p62'nin yukarı regüle edildiğini ve ayrıca p62'yi yukarı regüle ettiğini ve bir pozitif geri besleme döngüsü oluşturduğunu göstermektedir.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f7.jpg
                              Ayrı bir pencerede aç
                              7
                              Kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde yapısal olarak yüksek p62 ve Nrf2 seviyeleri ve p62 ile pozitif bir geri besleme ilişkisine sahip olan p62 pozitif olarak düzenlenmiş Nrf2
                              (A) Kadmiyumla dönüştürülmüş hücrelerde yapısal olarak yüksek p62 ve Nrf2 seviyeleri. Kadmiyumla dönüştürülmüş hücrelerden (CdT) tüm hücre lizatları ve bunların geçiş uyumlu dönüştürülmemiş hücreleri (BEAS-2BR) izole edildi. p62 ve Nrf2'nin protein seviyeleri, immünoblotlama kullanılarak analiz edildi. (B) p62, kadmiyumla dönüştürülmüş hücrelerde p62 ile pozitif bir geri besleme ilişkisi olan Nrf2'yi pozitif olarak düzenler. p62 veya Nrf2'nin yıkılması olan veya olmayan bu hücreler, 100 mm tabaklarda kültürlerdi. Bütün hücre lizatları izole edildi. p62 ve Nrf2'nin protein seviyeleri, immünoblotlama kullanılarak analiz edildi. Kadmiyumla dönüştürülmüş hücreler apoptoza dirençliydi

                              Önceki çalışmamız, kadmiyumla transforme edilmiş hücrelerin antiapoptotik proteinler Bcl-2 ve Bcl-xl'yi yüksek oranda eksprese ettiğini göstermektedir ( Son ve diğerleri, 2014 ). Bu iki proteinin gen promotörlerinde ARE siteleri vardır. Böylece, Nrf2, Bcl-2 ve Bcl-xl'yi yukarı regüle ederek apoptoz direncine yol açtı. Sonuçlar, dönüştürülmemiş BEAS-2BR hücrelerinde kadmiyum kaynaklı apoptotik hücre ölümlerinin doza bağlı bir şekilde arttığını, kadmiyumla dönüştürülmüş BEAS-2BR'de apoptotik hücre ölümlerindeki artışın dönüştürülmemiş BEAS-2BR hücrelerine kıyasla küçük olduğunu göstermiştir (Şekil 8). Sonuçlar, kadmiyumla dönüştürülmüş hücrelerde, Nrf2'nin bu iki anti-apoptotik proteinin gen promotorlarındaki ARE bölgelerine bağlanması yoluyla Nrf2'yi yukarı regüle eden Bcl-2 ve Bcl-xl'deki artışın, apoptoz direncine yol açtığını göstermektedir.
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f8.jpg
                              Ayrı bir pencerede aç
                              Şekil 8
                              Kadmiyumla dönüştürülmüş hücreler apoptoza dirençliydi
                              Geçiş uyumlu dönüştürülmemiş hücreler (BEAS-2BR) ve Cd(II) ile dönüştürülmüş hücreler (BEAS-2B-Cd), 24 saat boyunca CdCl2'ye (0-5 uM) maruz bırakıldı . Hücreler, Annexin V-floresein izotiyosiyanat/propidyum iyodür ile boyandıktan sonra akış sitometresi ile analiz edildi. Sonuçlar, üç bağımsız deneyde ortalama±SD olarak gösterilir. *, p<0.05, tedavi uygulanmayan BEAS-2BR hücreleriyle karşılaştırıldığında. Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde indüklenebilir Nrf2 ekspresyonunu arttırdı ve kadmiyum ile transforme edilmiş BEAS-2BR hücrelerinde konstitütif Nrf2 ekspresyonunu azalttı

                              1-8sonuçlar, kadmiyum kaynaklı malign hücre transformasyonunda ROS'un önemli olduğunu göstermektedir. Böylece, indüklenebilir Nrf2'yi artırarak ROS'u azaltmak, kadmiyum kaynaklı malign hücre dönüşümünü inhibe etti. Buna karşılık, kadmiyumla dönüştürülmüş hücrelerde, p62 yukarı regülasyonu yoluyla yapısal Nrf2 aktivasyonu apoptoz direncine neden oldu. Sulforaphane iyi bilinen bir antioksidandır. Ayrıca kadmiyumla dönüştürülmüş hücrelerde otofaji eksikliğini düzeltebilir ve p62'yi azaltabilir. Dönüştürülmemiş BEAS-2BR hücrelerinde sülforafanın indüklenebilir Nrf2'yi etkinleştirdiğini ve kadmiyumla dönüştürülmüş hücrelerde yapısal Nrf2'yi azalttığını tahmin ettik. Sonuçlarımız, dönüştürülmemiş BEAS-2BR hücrelerinde sülforafanın gerçekten de indüklenebilir Nrf2 ekspresyonunu yukarı regüle ettiğini göstermektedir (Şekil 9A). Kadmiyumla transforme edilmiş hücrelerde sülforafan, kurucu Nrf2'yi ve onun hedef anti-apoptotik geni Bcl-2'yi azalttı (9B). Hem parçalanmış poli ADP riboz polimerazın (C-PARP) hem de parçalanmış kaspaz-3'ün (C-kaspaz 3) yükseltilmiş ekspresyonu ayrıca, sülforafanın kadmiyumla dönüştürülmüş hücrelerin apoptoz kapasitesini restore ettiğini göstermiştir (9B).
                              Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı nihms975255f9.jpg
                              Ayrı bir pencerede aç
                              Şekil 9
                              Dönüştürülmemiş hücrelerde sülforafan ile aktive olan indüklenebilir Nrf2 ve kadmiyumla dönüştürülmüş hücrelerde azaltılmış yapısal Nrf2 ve Bcl-2
                              (A) Sulforaphane, dönüştürülmemiş hücrelerde Nrf2 ekspresyonunu arttırdı. BEAS-2BR hücreleri, 24 saat boyunca farklı konsantrasyonlarda (0, 2.5, 5 ve 10 uM) sülforafan ile işlendi. Hücreler toplandı ve tam protein lizatları ekstre edildi. Nrf2 ekspresyonu, immünoblotlama ile incelendi. (B) Sulforaphane, kadmiyumla dönüştürülmüş hücrelerde Nrf2 ve Bcl-2'yi inhibe etti ve apoptozu restore etti. Bu dönüştürülmüş hücreler (BEAS-2B-Cd), 24 saat boyunca farklı konsantrasyonlarda (0, 2.5, 5 ve 10 uM) sülforafan (SFN) ile işlendi. Bütün protein lizatları ekstre edildi. Protein seviyeleri immünoblotlama ile incelendi.


                              Git: TARTIŞMA

                              Bu çalışmanın amacı, sülforafanın dönüştürülmemiş hücrelerde indüklenebilir Nrf2'yi aktive edip edemediğini ve kadmiyum ile dönüştürülmüş hücrelerde yapısal Nrf2'yi azaltıp azaltamayacağını araştırarak kadmiyum kaynaklı karsinojenez mekanizmasını anlamak ve mekanizmaya dayalı önleme stratejisi geliştirmekti. Karsinojenez çok aşamalı bir süreçtir, ancak metal kaynaklı karsinojenezin mekanizmalarını tartışmak amacıyla, kavramsal olarak metal kaynaklı karsinojenezi iki aşamaya (erken ve geç) ayırıyoruz ( Son ve diğerleri , 2012 ; Xu ve diğerleri , 2017). Kadmiyum karsinogenezi iki aşamaya ayrılır. İlk aşamada, dönüştürülmemiş hücreler kadmiyum ile dönüştürülmüş hücrelere dönüşüme uğrar. Daha sonra ikinci aşamada, dönüştürülmüş hücreler tümör oluşumuna ilerleyebilir. Akış sitometrisi ve ESR spin yakalamayı kullanan bu çalışma, BEAS-2BR hücrelerinin kadmiyum tarafından üretilen ROS'a ve katalaz ve sülforafana maruz kalmasının kadmiyum kaynaklı ROS oluşumunu inhibe ettiğini göstermektedir. Yumuşak agar deneyinden elde edilen sonuçlar, oksidan enzimlerin (katalaz, SOD1 veya SOD2) aşırı ekspresyonunun, kadmiyum tarafından indüklenen yumuşak agar koloni oluşumunu inhibe ettiğini gösterir. Bu sonuçlar, kadmiyum kaynaklı ROS oluşumunun, kadmiyum kaynaklı malign hücre transformasyonunda önemli bir mekanizma olduğunu göstermektedir. Kadmiyum kaynaklı malign hücre transformasyonunda ROS'un önemi göz önüne alındığında, ROS, kadmiyum kaynaklı karsinojenezi önlemek için bir hedef olabilir. Çalışmamız aynı zamanda BEAS-2BR hücrelerinde, dönüştürülmemiş BEAS-2BR hücresinde sülforafanın kadmiyum kaynaklı ROS oluşumunu azalttığını ve sülforafan ile aktive olan indüklenebilir Nrf2'yi göstermektedir. Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde indüklenebilir Nrf2'yi arttırdı ve bu antioksidan proteinlerin promotor bölgesindeki ARE bölgesine bağlanarak Nrf2 hedef antioksidanını (katalaz ve SOD) yukarı regüle etti. Sülforafan, Cd ile indüklenen ROS'u azalttı ve Cd ile indüklenen hücresel dönüşümü inhibe etti. Bu sonuçlar, sülforafanın Nrf2'yi indüklemek ve kadmiyum karsinojenezinin ilk aşamasında kadmiyum kaynaklı hücre dönüşümünü önlemek için kullanılabileceğini göstermektedir. sülforafan, dönüştürülmemiş BEAS-2BR hücresinde kadmiyum kaynaklı ROS oluşumunu ve sülforafanla aktive olan indüklenebilir Nrf2'yi azalttı. Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde indüklenebilir Nrf2'yi arttırdı ve bu antioksidan proteinlerin promotor bölgesindeki ARE bölgesine bağlanarak Nrf2 hedef antioksidanını (katalaz ve SOD) yukarı regüle etti. Sülforafan, Cd ile indüklenen ROS'u azalttı ve Cd ile indüklenen hücresel dönüşümü inhibe etti. Bu sonuçlar, sülforafanın Nrf2'yi indüklemek ve kadmiyum karsinojenezinin ilk aşamasında kadmiyum kaynaklı hücre dönüşümünü önlemek için kullanılabileceğini göstermektedir. sülforafan, dönüştürülmemiş BEAS-2BR hücresinde kadmiyum kaynaklı ROS oluşumunu ve sülforafanla aktive olan indüklenebilir Nrf2'yi azalttı. Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde indüklenebilir Nrf2'yi arttırdı ve bu antioksidan proteinlerin promotor bölgesindeki ARE bölgesine bağlanarak Nrf2 hedef antioksidanını (katalaz ve SOD) yukarı regüle etti. Sülforafan, Cd ile indüklenen ROS'u azalttı ve Cd ile indüklenen hücresel dönüşümü inhibe etti. Bu sonuçlar, sülforafanın Nrf2'yi indüklemek ve kadmiyum karsinojenezinin ilk aşamasında kadmiyum kaynaklı hücre dönüşümünü önlemek için kullanılabileceğini göstermektedir. Sülforafan, Cd ile indüklenen ROS'u azalttı ve Cd ile indüklenen hücresel dönüşümü inhibe etti. Bu sonuçlar, sülforafanın Nrf2'yi indüklemek ve kadmiyum karsinojenezinin ilk aşamasında kadmiyum kaynaklı hücre dönüşümünü önlemek için kullanılabileceğini göstermektedir. Sülforafan, Cd ile indüklenen ROS'u azalttı ve Cd ile indüklenen hücresel dönüşümü inhibe etti. Bu sonuçlar, sülforafanın Nrf2'yi indüklemek ve kadmiyum karsinojenezinin ilk aşamasında kadmiyum kaynaklı hücre dönüşümünü önlemek için kullanılabileceğini göstermektedir.

                              Kronik inflamasyon, habis hücre dönüşümünü ve karsinojenezi teşvik eder (
                              Landskron ve diğerleri , 2014 ). Dönüştürülmemiş hücrelerde, metal kaynaklı maruziyetler yoluyla üretilen COX-2, TNF-α ve NF-κB gibi inflamatuar proteinler, metal kaynaklı karsinogenez mekanizmasında önemli bir parça olarak kabul edilir ( Wang ve diğerleri , 2016 ). Bu çalışmada elde edilen western blot sonuçları, kadmiyumla muamele edilmiş BEAS-2BR hücrelerinde TNF-a, NF-KB ve COX-2 seviyelerinin yükseldiğini göstermiştir. Birkaç çalışma, TNF-a'nın, enflamasyon ve kanser arasındaki molekülleri bağlayan bir aday olduğunu ileri sürmektedir ( Balkwill, 2002 ; Huang ve diğerleri , 1999 ; Micheau ve Tschopp, 2003) .). TNF-a, doku hasarı bölgesinde çeşitli aktive edilmiş hücreleri toplayan diğer inflamatuar sitokinler, kemokinler, büyüme faktörleri ve endotelyal yapışma faktörlerinden oluşan bir inflamatuar kaskadı başlatabilir ( Balkwill, 2002 ). TNF-a, kimyasal karsinojenin neden olduğu karsinojenezde gereklidir ve ayrıca anti-apoptotik aktivite gösteren NF-KB aktivasyonu için büyük bir indükleyicidir ( Philip ve diğerleri , 2004 ). Bu çalışma, kadmiyum tarafından üretilen ROS'un, NF-KB'yi aktive eden TNF-a'yı yukarı regüle ettiğini göstermektedir. TNF-α'nın enflamasyonu kansere bağlamadaki diğer bir rolü, bir kemokin ağı ve COX-2 ekspresyonunu düzenlemesi olabilir ( Balkwill, 2002).). Bu çalışma, kadmiyum maruziyetinin COX-2'yi arttırdığını göstermektedir. COX-2 ekspresyonu, LPS, TNF-a gibi proinflamatuar sitokinler ve epidermal büyüme faktörü gibi büyüme faktörleri dahil olmak üzere çok çeşitli uyaranlarla indüklenebilir ( Williams ve diğerleri , 1999 ). COX-2 enziminin ürünleri, iltihaplanmanın anahtar aracıları olan prostaglandinlerdir ( Nathan, 2002 ; Steele ve diğerleri , 2003 ). COX-2, çeşitli kanser türlerinde aşırı eksprese edilir ve hücresel proliferasyon, anti-apoptotik aktivite, anjiyogenez ve metastaz artışında rol oynar ( Eberhart ve diğerleri , 1994 ; Hida ve diğerleri , 1998 ; Hwangve diğerleri , 1998 ; Okami ve diğerleri , 1999 ; Prescott ve Fitzpatrick, 2000 ; Ristimaki ve diğerleri , 1997 ; Tsujii ve diğerleri , 1997 ). COX-2, sigara dumanından kaynaklanan bileşikler tarafından indüklenir, bu da sigara içimiyle tetiklenen, kansere yatkın, inflamatuar akciğer hastalıkları için olası bir mekanizmayı gösterir ( Martey ve diğerleri , 2004 ; Ouyang ve diğerleri , 2007).). COX-2'nin kadmiyum tarafından yukarı regülasyonu, COX-2'nin kadmiyum kaynaklı inflamasyon ve akciğer karsinogenezinde rol oynayabileceğini gösterir. Kronik inflamasyon, akciğer kanseri de dahil olmak üzere çok çeşitli insan kanserlerinin gelişiminde rol oynamaktadır ( Coussens ve Werb, 2002 ). Enflamasyon, gelişmiş hayatta kalma sinyali ve epitel hücre proliferasyonu ile ilişkilidir. Kadmiyum maruziyeti ile inflamasyonun artması, malign hücre dönüşümünün başlatılmasına ve desteklenmesine katılabilecek ve zamanla kadmiyum karsinogenezine katkıda bulunabilecek bir inflamatuar mikro-çevre oluşturabilir.

                              Otofaji, evrimsel olarak korunan bir katabolik süreçtir. Otofaji, hücresel homeostazın korunmasında önemlidir (
                              Choi 2012 ). Önceki çalışmamız, otofajinin, ROS oluşumunu inhibe ederek arsenik kaynaklı hücre transformasyonuna karşı hücre kendini koruyucu bir mekanizma olduğunu ve arsenikle muamele edilmiş BEAS-2BR hücrelerinde mitokondriyal ciroyu kolaylaştırdığını göstermektedir ( Zhang ve diğerleri , 2012 ). Daha önce birçok çalışma, otofajinin tümör baskılayıcı bir mekanizma olabileceğini bildirmişti ( Jiang ve ark ., 2015 ).). Bu çalışma, sülforafanın kadmiyumla muamele edilmiş BEAS-2BR hücrelerinde otofajiyi artırabildiğini göstermektedir. Sülforafan tarafından otofajinin artmasının, dönüştürülmemiş hücrelerde mitokondriyal ciroyu kolaylaştırması ve ROS oluşumunu ve kadmiyum kaynaklı malign dönüşümü inhibe etmesi çok olasıdır. Bu çalışma, kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinin otofaji eksikliği özelliği sergilediğini göstermektedir. Bu otofaji eksikliği olan hücrelerde, otofagozomlar lizozomlarla kaynaşmaz ve p62 birikimine yol açar ( Mathew ve diğerleri , 2009).). Sülforafan, dönüştürülmemiş BEAS-2BR hücrelerinde kadmiyum kaynaklı otofajiyi ve kadmiyumla dönüştürülmüş hücrelerde otolizozomlar oluşturmak için otofagozomların lizozomlarla füzyonunu artırarak otofaji akışını arttırdı. Kadmiyumla dönüştürülmüş hücrelerin otofaji yetkinliğinin sülforafan ile restorasyonu, kadmiyumla dönüştürülmüş hücrelerde p62 birikimini ortadan kaldırdı, çünkü p62, Nrf2'nin bir inhibitörü olan Keap1'e bağlanabiliyor, p62'nin artışı Nrf2'yi artırıyor. Sülforafan, kadmiyumla dönüştürülmüş hücrelerin otofaji yeterliliğini restore etti, p62'yi inhibe etti ve kadmiyumla dönüştürülmüş hücrelerde Nrf2'yi azalttı.

                              Nrf2'nin yapısal aşırı ekspresyonu, kadmiyumla transforme edilmiş hücrelerde Bcl-2 ve Bcl-xl'nin ARE bölgelerine bağlanma aktivitelerini arttırır (
                              Son ve diğerleri , 2014 ). Bu çalışmada gözlemlenen apoptoz direncinin artması, muhtemelen bu transkripsiyon faktörünün bu iki anti-apoptotik proteinin ARE bölgelerine bağlanması yoluyla Nrf2 tarafından Bcl-2 ve Bcl-xl'nin yukarı regülasyonu nedeniyledir. Mevcut çalışma, sülforafanın, kadmiyumla dönüştürülmüş hücrelerde yapısal olarak Nrf2 ekspresyonunu inhibe ettiğini ve anti-apoptotik protein Bcl-2'nin ekspresyonunu azalttığını göstermektedir. Nrf2'nin sülforafan tarafından yapısal ekspresyonunun azalmasının, hem anti-apoptozis hem de anti-oksidan genlerin bağlanma aktivitesini azaltması, artan apoptoza ve yüksek ROS ekspresyonuna yol açması muhtemeldir.

                              Özetle, bu çalışmada elde edilen sonuçlar aşağıdaki sonuçları üretmiştir. (a) Dönüştürülmemiş hücrelerde, BEAS-2BR hücrelerinin kadmiyum tarafından üretilen ROS'a maruz kalması. ROS üretimi yoluyla, kadmiyum, ROS reaksiyonu yoluyla kadmiyumun neden olduğu malign hücre transformasyonuna katkıda bulunabilecek bir inflamatuar mikro-ortam yarattı. (b) Kadmiyumla dönüştürülmüş hücreler, otofagozomların birikmesine ve p62'nin artmasına neden olan otofaji eksikliği özelliğine sahiptir. Bu protein, pozitif geri besleme mekanizması yoluyla p62'yi de düzenleyen Nrf2'yi yukarı regüle etti. Kurucu Nrf2, aşağı akış antiapoptotik proteinleri Bcl-2 ve Bcl-xl'yi artırarak apoptoz direncine neden oldu. (c) Dönüştürülmemiş BEAS-2BR hücrelerinde, sülforafan otofajiyi arttırdı, Nrf2'yi aktive etti ve ROS'u azalttı. Kadmiyumla dönüştürülmüş BEAS-2BR hücrelerinde, sülforafan, otofaji yeterliliğini geri kazandırdı, Nrf2'yi azalttı ve apoptoz direncini azalttı. Bu nedenle, sülforafanın ikili rolü vardır. Dönüştürülmemiş BEAS-2BR hücrelerinde, bu doğal bileşik, ROS ve habis hücre dönüşümünü azaltmak için indüklenebilir Nrf2'yi indükledi. Kadmiyumla dönüştürülmüş hücrelerde, yapısal Nrf2'yi azalttı ve apoptoz direncini azalttı. Sülforafanın ikili rolü, bu doğal bileşiği kadmiyumun neden olduğu karsinojenezin önlenmesi için ideal bir ajan haline getirir.


                              ​ Öne Çıkanlar

                              • Kadmiyumla dönüştürülmüş hücrelerin sülforafan tedavisi, otofajiyi geri yükler
                              • Kadmiyumla dönüştürülmüş hücrelerin sülforafan tedavisi, yapısal Nrf2'yi azaltır
                              • Sülforafan, kadmiyum kaynaklı akciğer kanserojenezine karşı korur
                              • Sulforaphane, kadmiyum kaynaklı ROS'u azaltır
                              • Sülforafan, indüklenebilir Nrf2'yi aktive edebilir ve yapısal Nrf2'yi azaltabilir

                              Git: Teşekkür

                              Kentucky Üniversitesi teknik ve idari desteğinden Hong Lin'e teşekkür ederiz. Bu araştırma Ulusal Sağlık Enstitüleri [R01ES021771, R01ES020870, R01ES025515, R01ES28984, R01ES21771 ve P30ES026529] tarafından desteklenmiştir.

                              Git: Dipnotlar


                              Yayıncının Sorumluluk Reddi: Bu, yayına kabul edilmiş, düzenlenmemiş bir makalenin PDF dosyasıdır. Müşterilerimize bir hizmet olarak, el yazmasının bu erken versiyonunu sunuyoruz. Makale, alıntı yapılabilir son haliyle yayınlanmadan önce, kopya düzenleme, dizgi ve ortaya çıkan kanıtın gözden geçirilmesinden geçecektir. Lütfen, üretim sürecinde içeriği etkileyebilecek hataların keşfedilebileceğini ve dergi için geçerli olan tüm yasal uyarıların geçerli olduğunu unutmayın.


                              Çıkar çatışması

                              Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.


                              Git: Referanslar

                              • Alkharashi NAO, Periasamy VS, Athinarayanan J, Alshatwi AA. Sülforafan, insan periferik kan lenfositlerinde ve monositlerinde kadmiyum kaynaklı toksisite modelini hafifletir. Çevre Toksikol. farmakol. 2017; 55 :223–239. [ PubMed ] [ Google Akademik ]
                              • Alkharashi NAO, Periasamy VS, Athinarayanan J, Alshatwi AA. İnsan mezenkimal kök hücrelerinde kadmiyum toksisitesine karşı sülforafan kaynaklı koruyucu mekanizmaların değerlendirilmesi. Çevre Bilimi. Kirlilik. Araş. Int. 2018; 25 :10080–10089. [ PubMed ] [ Google Akademik ]
                              • Balkwill F. Tümör nekroz faktörü mü yoksa tümör teşvik edici faktör mü? Sitokin Büyüme Faktörü Rev. 2002; 13 :135–141. [ PubMed ] [ Google Akademik ]
                              • Balkwill F. TNF-alfa kanserin teşviki ve ilerlemesinde. Kanser Metastazı Rev 2006; 25 :409–16. [ PubMed ] [ Google Akademik ]
                              • Brandenburg LO, Kipp M, Lucius R, Pufe T, Wruck CJ. Sulforaphane, birincil sıçan mikrogliasında LPS kaynaklı iltihabı baskılar. iltihap Araş. 2010; 59 :443–450. [ PubMed ] [ Google Akademik ]
                              • Chen N, Karantza V. Otofaji, kanserde terapötik bir hedef olarak. Kanser Biol. orada. 2011; 11 :157–168. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Chen C, Xun P, Nishijo M, Sekikawa A, He K. Kadmiyum maruziyeti ve pankreas kanseri riski: mesleki maruziyet öyküsü olmayan bireyler arasında ileriye dönük kohort çalışmalarının ve vaka kontrol çalışmalarının bir meta-analizi. Çevre. bilim Kirlilik. Araş. Int. 2015; 22 :17465–17474. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Chen C, Xun P, Nishijo M, Carter S, He K. Kadmiyum maruziyeti ve prostat kanseri riski: genel ve mesleki popülasyonlar arasında kohort ve vaka kontrol çalışmalarının meta analizi. bilim 2016a ; 6 :25814. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Chen C, Xun P, Nishijo M, He K. Kadmiyum maruziyeti ve akciğer kanseri riski: genel ve mesleki popülasyonlar arasında kohort ve vaka kontrol çalışmalarının meta analizi. J Expo Sci. Çevre. Epidemiol. 2016b; 26 :437-444. [ PubMed ] [ Google Akademik ]
                              • Choi KS. Otofaji ve kanser. Tecrübe. Mol. Med. 2012; 44 :109–120. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Coussens LM, Werb Z. Enflamasyon ve kanser. Doğa. 2002; 420 :860-867. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Eberhart C, Coffey R, Radhika A, Giardiello F, Ferrenbach S, Dubois R. İnsan kolorektal adenomları ve adenokarsinomlarında siklooksijenaz-2 gen ekspresyonunun düzenlenmesi. Gastroenteroloji. 1994; 107 :1183-1188. [ PubMed ] [ Google Akademik ]
                              • Echizen K, Oshima H, Nakayama M, Oshima M. Gastrointestinal kanser gelişimini ve istilasını destekleyen inflamatuar mikro ortam. Adv Biol Regül. 2018 S2212-4926(18)30072-1. [ PubMed ] [ Google Akademik ]
                              • Glick D, Barth S, Macleod KF. Otofaji: hücresel ve moleküler mekanizmalar. J. Pathol. 2010; 221 :3–12. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Herman-Antosiewicz A, Johnson DE, Singh SV. Sülforafan, insan prostat kanseri hücrelerinde sitokrom C salınımını ve apoptozu inhibe etmek için otofajiye neden olur. Kanser Araş. 2006; 66 :5828–5835. [ PubMed ] [ Google Akademik ]
                              • Hida T, Yatabe Y, Achiwa H, Muramatsu H, Kozaki K, Nakamura S, Ogawa M, Mitsudomi T, Sugiura T, Takahashi T. Siklooksijenaz 2'nin artan ekspresyonu, insan akciğer kanserlerinde, özellikle adenokarsinomlarda sıklıkla meydana gelir. Kanser Araş. 1998; 58 :3761–3764. [ PubMed ] [ Google Akademik ]
                              • Huang C, Li J, Ma WY, Dong Z. JNK aktivasyonu, 12-O-Tetradekanoilforbol-13-Asetat tarafından değil, tümör nekroz faktörü-alfa tarafından indüklenen JB6 hücre transformasyonu için gereklidir. J. Biol. Kimya 1999; 274 :29672–29676. [ PubMed ] [ Google Akademik ]
                              • Hwang D, Scollard D, Byrne J, Levine E. İnsan meme kanserinde siklooksijenaz-1 ve siklooksijenaz-2'nin ifadesi. J. Natl. Kanser Enst. 1998; 90 :455–460. [ PubMed ] [ Google Akademik ]
                              • IARC. Cam imalat endüstrisinde berilyum, kadmiyum, cıva ve maruziyetler. Çalışma Grubu görüşleri ve uzman görüşleri, Lyon, 9–16 Şubat 1993. IARC Monogr Değerlendirmesi Kanser Riskleri Hum. 1993; 58 :1–415. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Jain A, Lamark T, Sjøttem E, Larsen KB, Awuh JA, Øvervatn A, McMahon M, Hayes JD, Johansen T. p62/SQSTM1, NRF2 transkripsiyon faktörü için bir hedef gendir ve antioksidan yanıt elementini indükleyerek pozitif bir geri besleme döngüsü oluşturur. tahrikli gen transkripsiyonu. J Biol Chem. 2010; 285 :22576–22591. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Jiang X, Overholtzer M, Thompson CB. Hücresel metabolizma ve kanserde otofaji. J. Clin. Yatırım. 2015; 125 :47-54. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Ke Y, Reddel RR, Gerwi BI, Miyashita M, McMenamin M, Lechner JF, Harris CC. Entegre SV40 virüs T antijen genlerine sahip insan bronşiyal epitel hücreleri, skuamöz farklılaşma geçirme yeteneğini korur. Farklılaşma. 1988; 38 :60-66. [ PubMed ] [ Google Akademik ]
                              • Kim J, Song H, Heo HR, Kim JW, Kim HR, Hong Y, Yang SR, Han SS, Lee SJ, Kim WJ, Hong SH. Kadmiyum kaynaklı ER stresi ve inflamasyona, insan bronş epitel hücrelerinde C/EBP-DDIT3 sinyalleşmesi aracılık eder. Tecrübe. Mol. Med. 2017; 49 :e372. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Landskron G, De la Fuente M, Thuwajit P, Thuwajit C, Hermoso MA. Tümör mikroçevresinde kronik inflamasyon ve sitokinler. J. İmmünol. Araş. 2014; 2014 :149185. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Larsson SC, Orsini N, Wolk A. İdrar kadmiyum konsantrasyonu ve meme kanseri riski: sistematik bir inceleme ve doz-yanıt meta-analizi. Ben. J. Epidemiol. 2015; 182 :375–380. [ PubMed ] [ Google Akademik ]
                              • Lee JH, Jeong JK, Park SY. Sülforafan kaynaklı otofaji akışı, AMPK yolu yoluyla prion protein aracılı nörotoksisiteyi önler Sinirbilim. 2014; 278 :31–39. [ PubMed ] [ Google Akademik ]
                              • Levine B, Klionsky DJ. Kendi kendine sindirimin gelişimi: otofajinin moleküler mekanizmaları ve biyolojik işlevleri. geliştirici Hücre. 2004; 6 :463-477. [ PubMed ] [ Google Akademik ]
                              • Martey CA, Pollock SJ, Turner CK, O'ReillyM KMA, Baglole CJ, Phipps RP, Sime PJ. Sigara dumanı, insan akciğer fibroblastlarında siklooksijenaz-2 ve mikrozomal prostaglandin E2 sentazını indükler: akciğer iltihabı ve kanser için çıkarımlar. Ben. J. Physiol. Akciğer. Hücre. Mol. Fizol. 2004; 287 :L981–L991. [ PubMed ] [ Google Akademik ]
                              • Mathew R, Karp CM, Beaudoin B, Vuong N, Chen G, Chen HY, Bray K, Reddy A, Bhanot G, Gelinas C, Dipaola RS, Karantza-Wadsworth V, White E. Otofaji, p62'nin ortadan kaldırılması yoluyla tümör oluşumunu baskılar. Hücre. 2009; 137 :1062–1075. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Micheau O, Tschopp J. TNF reseptörü I aracılı spoptozun iki sıralı sinyal kompleksi aracılığıyla uyarılması. Hücre. 2003; 114 :181–190. [ PubMed ] [ Google Akademik ]
                              • Nakahira K, Cloonan SM, Mizumura K, Choi AM, Ryter SW. Otofaji: akciğer hastalığında redoks dengesi, inflamasyon ve apoptozun önemli bir moderatörü. Antioksit Redoks Sinyali. 2014; 20 :474-494. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Nathan C. Enflamasyonda kontrol noktaları. Doğa. 2002; 420 :846-852. [ PubMed ] [ Google Akademik ]
                              • Okami J, Yamamoto H, Fujiwara Y, Tsujie M, Kondo M, Noura S, Oshima S, Nagano H, Dono K, Umeshita K, Ishikawa O, Sakon M, Matsuura N, Nakamori S, Monden M. Overexpression of Cyclooxygenase-2 Pankreas Karsinomunda. klinik. Kanser Araş. 1999; 5 :2018–2024. [ PubMed ] [ Google Akademik ]
                              • Olszowski T, Baranowska-Bosiacka I, Gutowska I, Chlubek D. Kadmiyumun proinflamatuar özellikleri. Acta Biochim Pol. 2012; 59 :475–482. [ PubMed ] [ Google Akademik ]
                              • Ouyang W, Ma Q, Li J, Zhang D, Ding J, Huang Y, Xing M, Huang C. Benzo[a]piren diol-epoksit (B[a]PDE), MAPKs/AP-1 aracılığıyla COX-2 ifadesini düzenler ve fare epidermal Cl41 hücrelerinde IKKβ/NF-KB. Mol. kanserojen. 2007; 46 :32–41. [ PubMed ] [ Google Akademik ]
                              • Pankiv S, Clausen TH, Lamark T, Brech A, Bruun JA, Outzen H, Øvervatn A, Bjørkøy G, Johansen T. p62/SQSTM1, her yerde bulunan protein agregatlarının otofaji ile bozulmasını kolaylaştırmak için doğrudan Atg8/LC3'e bağlanır. J. Biol. Kimya 2007; 282 :24131–24145. [ PubMed ] [ Google Akademik ]
                              • Philip M, Rowley DA, Schreiber H. Kanser indüksiyonunda tümör promotörü olarak inflamasyon. Semin. Kanser Biol. 2004; 14 :433–439. [ PubMed ] [ Google Akademik ]
                              • Phuagkhaopong S, Ospondpant D, Kasemsuk T, Sibmooh N, Soodvilai S, Power C, Vivithanaporn P. Kadmiyum kaynaklı IL-6 ve IL-8 ekspresyonuna ve astrositlerden salınmasına MAPK ve NF-KB yolları aracılık eder. Nörotoksikoloji. 2017; 60 :82–91. [ PubMed ] [ Google Akademik ]
                              • Prescott SM, Fitzpatrick FA. Siklooksijenaz-2 ve karsinojenez. Biyokimya. Biyofiz. Acta. 2000; 1470 :M69–M78. [ PubMed ] [ Google Akademik ]
                              • Rafati Rahimzadeh M, Rafati Rahimzadeh M, Kazemi S, Moghadamnia AA. Kadmiyum toksisitesi ve tedavisi: Bir güncelleme. Hazar J. Stajyer Med. 2017; 8 :135–145. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Ristimaki A, Honkanen N, Jankala H, Sipponen P, Harkonen M. İnsan mide karsinomunda siklooksijenaz-2 ekspresyonu. Kanser Araş. 1997; 57 :1276–1280. [ PubMed ] [ Google Akademik ]
                              • Sestili P, Fimognari C. Sülforafanın Sitotoksik ve Antitümör Aktivitesi: Reaktif Oksijen Türlerinin Rolü. Biomed Arş. 2015; 2015 :402386. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Shi X, Lenhart A, Mao Y. Peroksinitrit ayrışması üzerine ESR spin yakalama araştırması: hidroksil radikal üretimi için kanıt yok. Biyokimya. ve Biyofiz. Araş. Komün. 1994a; 203 :1515–1521. [ PubMed ] [ Google Akademik ]
                              • Shi X, Dalal N, Kasprzak KS. Nikel(II) komplekslerinin varlığında sodyum sülfit, nikel(II) sülfit ve nikel sülfür oksidasyonundan gelişmiş hidroksil radikali ve kükürt trioksit anyon radikali üretimi. Çevre. Sağlık Perspektifi. 1994b; 102 :91-96. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Son YO, Lee JC, Hitron JA, Pan J, Zhang Z, Shi X. Kadmiyum, cilt epidermal hücre hattında JNK ve p53 aracılı yollar aracılığıyla hücre içi Ca2+ ve H2O2'ye bağlı apoptozu indükler. Toksikol. bilim 2010a; 113 :127–137. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Son YO, Hitron JA, Wang X, Chang Q, Pan J, Zhang Z, Liu J, Wang S, Lee JC, Shi X. Cr(VI), reaktif oksijen türlerinin aracılık ettiği p53 yoluyla mitokondriyal aracılı ve kaspaz bağımlı apoptozu indükler JB6 Cl41 hücrelerinde aktivasyon. Toksikol. Uygulama farmakol. 2010b; 245 :226–235. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Son YO, Wang X, Hitron JA, Zhang Z, Cheng S, Budhraja A, Ding S, Lee JC, Shi X. Kadmiyum, cilt epidermal hücrelerinde LKB1-AMPK sinyallemesinin ROS'a bağlı aktivasyonu yoluyla otofajiye neden olur. Toksikol. Uygulama farmakol. 2011; 255 :287–296. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Son YO, Wang L, Poyil P, Budhraja A, Hitron JA, Zhang Z, Lee JC, Shi X. Kadmiyum, PI3K/AKT/GSK-3β/β-katenin sinyalinin ROS'a bağlı aktivasyonu yoluyla BEAS-2B hücrelerinde karsinojenezi indükler . Toxicol Appl Pharmacol. 2012; 264 :153–160. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Son YO, Pratheeshkumar P, Roy RV, Hitron JA, Wang L, Zhang Z, Shi X. Nrf2/p62 apoptoz direncinde sinyal ve kadmiyum kaynaklı karsinojenezdeki rolü. J. Biol. Kimya 2014; 289 :28660–28675. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ] Geri çekildi
                              • Steele VE, Hawk ET, Viner JL, Lubet RA. Kanserin kemoprevansiyonunda nonsteroid antiinflamatuar ilaçların mekanizmaları ve uygulamaları. Mutat. Araş. 2003; 523–524 :137–144. [ PubMed ] [ Google Akademik ]
                              • Sui X, Lei L, Chen L, Xie T, Li X. Mesane kanserinin başlangıcında ve ilerlemesinde inflamatuar mikro ortam. Oncotarget. 2017; 8 :93279-93294. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Tsujii M, Kawano S, DuBois RN. İnsan kolon kanseri hücrelerinde siklooksijenaz-2 ekspresyonu metastatik potansiyeli arttırır. Proc. Natl. Acad. bilim ABD 1997; 94 :3336–3340. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Wang L, Wise JT, Zhang Z, Shi X. Metal karsinojenezinde reaktif oksijen türlerinin ilerlemesi ve beklentileri. Kör. farmakol. 2016 ; 2 :178–186. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Williams C, Mann M, DuBois R. Siklooksijenazların inflamasyon, kanser ve gelişimdeki rolü. Onkogen. 1999; 18 :7908-7916. [ PubMed ] [ Google Akademik ]
                              • Wu Y, Zhou BP. Kanser hücresi göçü ve istilasında TNF-alfa/NF-kappaB/Salyangoz yolu. Br J Kanser. 2010; 102 :639-644. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Xu J, Wise JTF, Wang L, Schumann K, Zhang Z, Shi X. Metal Karsinogenezinde Oksidatif Stresin İkili Rolleri. J Environ Pathol Toxicol Oncol. 2017; 36 :345–376. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Yang L, Palliyaguru DL, Kensler TW. Tutumlu Kemoprevensiyon: Sülforafan Açısından Zengin Gıdalarla Nrf2'yi Hedefleme. Semin Oncol. 2016a; 43 :146–153. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Yang SH, Uzun M, Yu LH, Li L, Li P, Zhang Y, Guo Y, Gao F, Liu MD, He JB. Sulforaphane, Nrf2/ARE Sinyal Yollarının Aktivasyonu Yoluyla Kadmiyuma Maruz Kalmış Kunming Farelerinde Testis Hasarını Önler. Int. J. Mol. bilim 2016b; 17 :E1703. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                              • Zhang T, Qi Y, Liao M, Xu M, Bower KA, Frank JA, Shen HM, Luo J, Shi X, Chen G. Otofaji, arsenik kaynaklı hücre dönüşümüne karşı hücre kendini koruyucu bir mekanizmadır. Toksikol. bilim 2012; 130 :298–308. [ PubMed ] [ Google Akademik ]

                              Yorum yap

                              Hazırlanıyor...
                              X