Duyuru

Collapse
No announcement yet.

Zencefil, Ginger, Zingiber officinale

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Zencefil, Ginger, Zingiber officinale

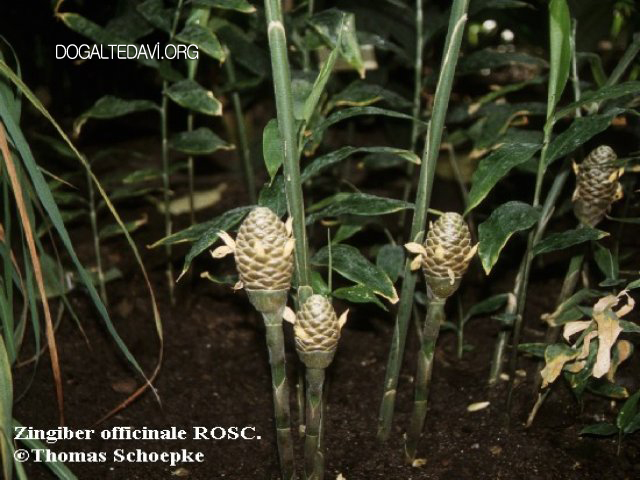
    ZENCEFİL Çok Yıllık | 1-2m | 5-9 Aylar | Ça,Ba,Ho,Na,Ar | Kökü


    Zencefil, Ingwer, Zingiber officinale ROSCOE
    Familyası: Zencefilgillerden, Ingwergewâchse, Zingiberaceae
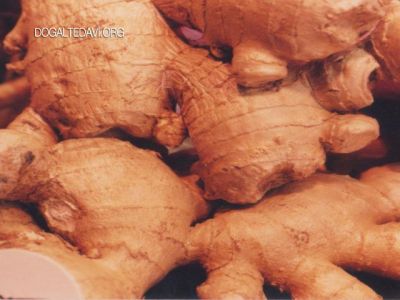
    Drugları: Zencefil kökü; Zingiberis rhizoma Zencefil esansı; Zingiberis aetheroleumZencefil kökünden çay, esans, tentür ve natürel ilaç yapılır.
    Giriş: Zencefilin asıl vatanı Hindistan olup buradan diğer ülkelere ya-yılmıştır. Günümüzde Jamaika, Çin ve Hint zencefili diye anılan çeşitli türleri vardır ve bunlardan en kalitelisi Jamaika zencefilidir. Mendoza Doğu Hindistan’dan Amerika’ya 1547 yılında getirmiş ve bu tarihten iti-baren burada yetiştirilmeye başlanmıştır. Tarihte baharat olarak kullanılan zencefil pasta, bira ve şarap yapımında kullanılmış, çorba ve etli yemeklere katılmıştır. Zingiber kelimesi Hintçe singovera (boynuz gibi) kelimesinde türemiştir.
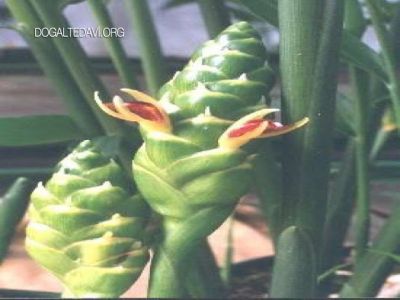
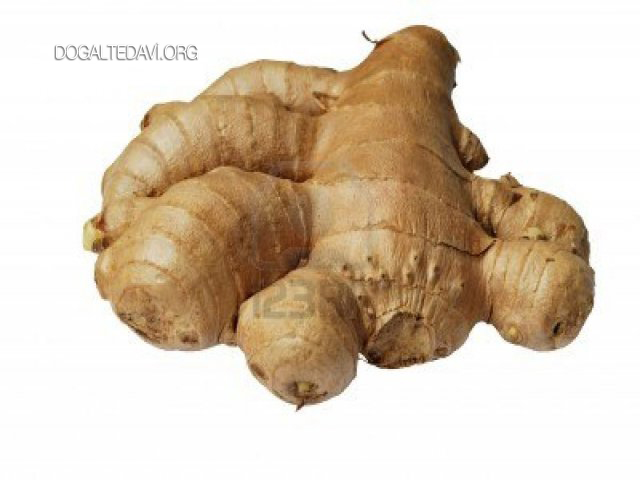
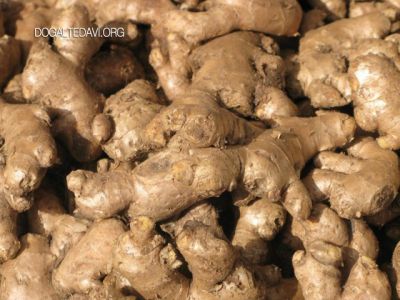
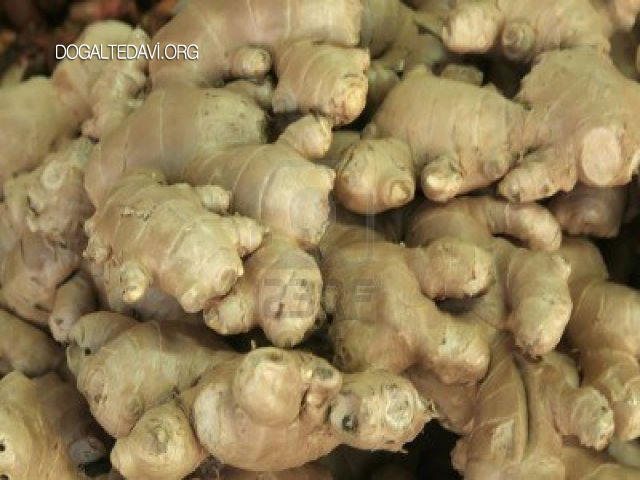
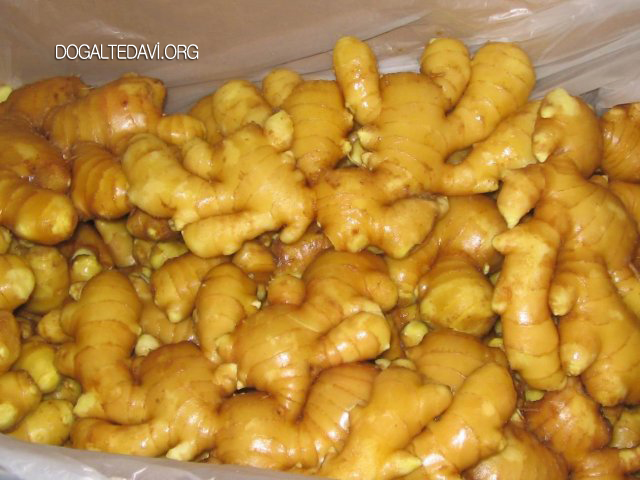
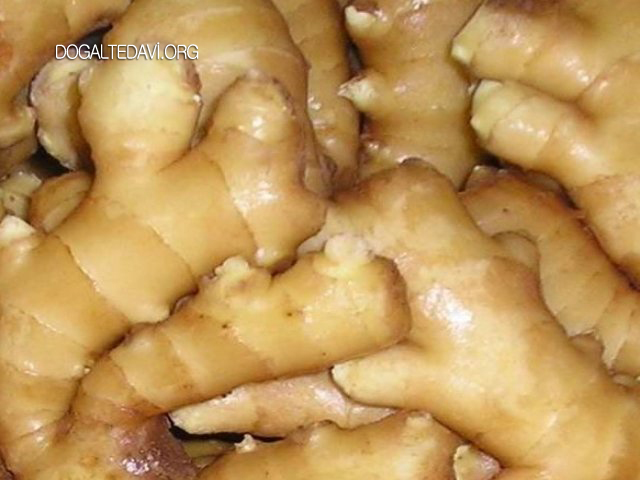
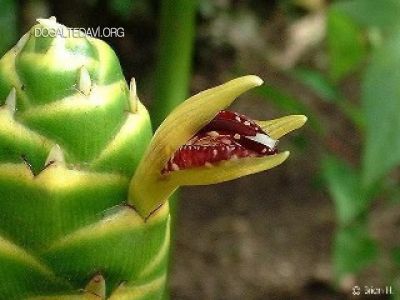
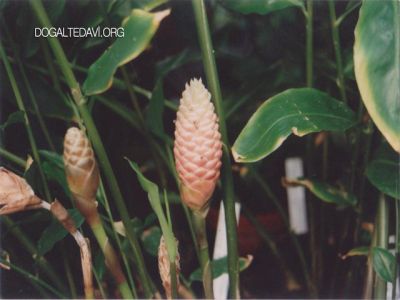
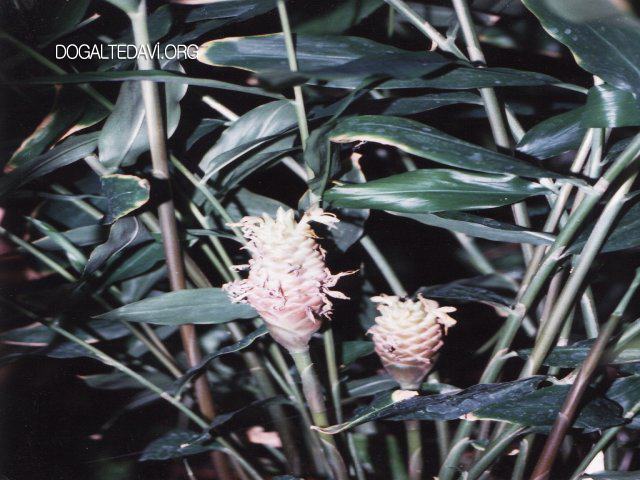
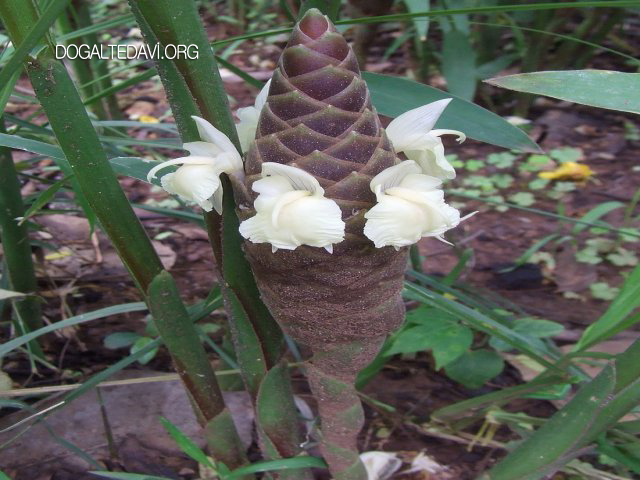
    Botanik: Zencefil 1-2m boyunda çok yıllık bitki olup tropik ülkelerde yetişir. Kökleri yumru gibi birbirine bağlı, yatsı, boynuz gibi ve etlimsi olup bu köklerle çevresine yayılır. Oval şekilde kenarları bütün fakat hafif dalgalı, koyu yeşil renklidir. Yaprak bir gövdeye sarılan boru şeklindeki kısım, bir de gövdeye oturmuş olan iki kısımdan oluşur. Yapraklı sürgünler 1-2m boyunda olabilirken çiçek koçanını taşıyan sürgün 20cm boyundadır. Çiçek koçanı 4-6cm büyüklüğünde olup üzeri sıra sıra kiremitlerle dizilmiş gibidir. Bu kiremit şeklindeki esmerimsi yaprakların altından çıkan çiçek sapları üzerinde çiçekleri bulunur.
    Yetiştirilmesi: Tropik ülkelerde yetiştirilen bitki Türkiye’nin sıcak bölge-lerinde yazın dışarıda kışın içerde yetiştirilebilir.
    Hasat zamanı: Sonbaharda yaprakları solup döküldükten sonra kökleri çıkartılarak iyice yıkanır, dış kabuğu soyulup ve bir gece soğuk suda bekletildikten sonra güneşte kurutulur.
    Bileşimi: Zencefil kökünün birleşimindeki maddeleri şöyle sıralayabiliriz;
    a) Eterik yağlar %1-3 arasında olup bunlarda 3 gruba ayrılır. 1)Sesquiterpenler; (-)-α-Zingiberen %30, Sesquiphellandren %15-20 (-)-β-Bisabolen %10-15 (+)-ar-Curcumen, α-Farnesen 2) Sesquiterpenalkoller; β-Sesquiphellandrol, Zingiberol (cis ve trans-β- Eudesmoldan oluşur)
    3) Monoterpenlerler; Neral, Geraniol, Citral ve Campher
    b) Arylalkanlar (Phenylpropanlar) %5-8 oranında olan bu bileşikler uçucu değildir ve 4 gruba ayrılırlar.
    1) Gigerollar [6]-Gingerol en önemlisi olup ayrıca [8]Gingerol, [10]-Gingerol, Gingerolmetileter, Gingerol-asetat ve Gingerolsulfonasit
    2) Shogaoller; [6]-Shogaol en etkili olanı olup bundan daha büyük olanların kalitesi düşüktür. Shogaoller zencefilin depolanması sırasında Gingerollerin parçalanması ile ortaya çıkar.
    3) Zingerollar depolama sırasında Gingerollerin parçalanmasında ortaya çıkar. Fazla olursa kaliteyi düşürür.
    4) Diarylheptanoitler; Gingerenon A ve B c) Hidroksibenzoeasit türevleri; Ferula asit, p-Cumarasit, Sinapinasit, p-hidroksibenzoeasit, Vanillenasit
    d) Ayrıca Sabit yağlar, şeker, müsilaj, şeker ve Antosiyanidinlerden; Cynadin-3-glikozit

    Araştırmalar: Zencefil kökü tozu ile üç önemli alanda arştırmalar ya-pılmıştır. Birinci olarak Kinesiya (bulantı, kusma, baş dönmesi gibi rahatsızlıklara araba veya vapur tutması sonucu) üzerine yapılan araştırma-larda gayet açık ve net olup etkisi ispatlanmıştır. Romatizma ve kansere karşı etkisi üzerine yapılan deneylerde etkili olduğu görülmüş fakat ne-ticeleri henüz netleşmemiştir. Kinesiya ile ilgili deneylerden birkaç örnek verebiliriz;
    1) D.B.Mowrey ve ekibi 1982’de 36 Kinesiya rahatsızlığı (gemi, vapur, tren, uçak veya araba tutması nedeni ile kişide görülen bulantı, kusma kırgınlık ve baş dönmesi gibi haller) olan hasta üzerinde tedavi denemesi yapılmıştır. Bu hastalara Zencefil tozundan günde 1gr 3 defa vermek suretiyle yapılan tedavide hastaların iyileştiği görülmüş-tür. (ZP.4.00.206)
    2) A.Grontued, E.Hentzer ve3 ekibi 1986’da vertigo (baş dönmesi ve bulantı) rahatsızlığı olan 8 hastaya günde 1gr Zencefil tozu vermiş ve hastaların iyileştiğini tespit etmiştir. (ZP.4.00.206). A.Grontued ve ekibi 1988’de 79 deniz subayı üzerinde zencefil tozu ve plasebo ile tedavi denemesi yapmıştır. Zencefil tozu alanların kinesiya rahatsız-lıklarından (kusma, baş dönmesi, bulantı ve aşırı terleme) kurtulduk-larını tespit etmiştir.
    3) MB.Bone, DJ.Wilkinson, JR.Young, J.Mc.Neil, Chartton ve ekipleri 1990’da kusma rahatsızlığı (emetik) olan 60 hasta üzerinde 1gr Zencefil tozu vererek tedavi denemesi yapmışlar ve neticede has-taların iyileştiği görülmüştür. (ZP.4.00.206)
    4) K.C.Srivastava, T.Mustafa ve ekipleri 1989 ve 1992’de toplam 56 romatizmalı hasta üzerinde Zencefil tozu ile tedavi denemesi yapmışlar ve hastaların iyileştiğini tespit etmişlerdir. (ZP.4.00.206)
    5) Hamilelik kusmasına karşı Fischer-Rasmussen ve ekibi 1990 yılında hastalar üzerinde Zencefil tozu ile tedavi denemesi yapmışlar. Bir kısmında kusma tamamen yok olurken bir kısmında da oldukça azalmıştır. (P.T.225)
    6) Londra’nın St.Bartholomes Hospital isimli hastanesinde 1990 yılında ameliyat sonrası bulantı (postoperatif nausea) rahatsızlığı olan hastalar üzerinde Zencefil tozu veya kimyasal ilaçla tedavi denemesi yapılmış ve Zencefil tozu alanlarda çabuk iyileşme görülmüştür. (A.Chevallier.153)
    Tesir şekli: Antiemetik (kusmayı önleyici), bulantı önleyici, salgı artırıcı, şişkinliği önleyici, kalbi kuvvetlendirici ve bağırsakları çalıştırıcı (peristaltik) özelliklere sahiptir.
    Kullanılması:
    a) Araştırmalara göre; yapılan araştırmalarda ispatlanmıştır ki Zencefil kökü tozu, başta kusma, kinesiyaya (vapur, gemi, araba, uçak, tren vb vasıtaların sebep olduğu kusma, bulantı, kırgınlık ve baş dönmesi gibi rahatsızlıkların) etkili olduğu tespit edilmiştir.
    b) Komisyon E’nin 05/05/1988 tarih 85 nolu ve 13/03/1990 tarih ve 50 nolu Monografi bildirisinde hazımsızlık ve kinesiya rahatsızlığına (seyahat hastalığı) karşı etkili olduğu beyan edilmiştir. c) Homeopati’de; Zencefil kökünden elde edilen tentürün başta burun deliklerinin kuruması, öksürük, astım, romatizma, hazım rahatsızlıkları ve gırtlak ağrısına karşı etkili olduğu iddia edilmektedir. d) Aroma tedavisi; Zencefil yağı başta ara doku iltihapları, bademcik iltihapları, iştahsızlık, dermansızlık, hazım rahatsızlıkları (şişkinlik ve kabızlık) seyahat hastalıkları (kinesiya) ve iktidarsızlığa karşı kullanılır. e) Halk arasında; kusma, bulantı, baş dönmesi ve kırgınlık gibi seyahat sırasında çıkan rahatsızlıklar ile hamile kadınlarda kusma, baş ağrısı, migren, kramp, cinsel yetersizlik (iktidarsızlık), kokuşma, şişkinlik, kabızlık, grip, ishal ve terleme gibi rahatsızlıklar, mide ve karaciğer üşütmesi ve de kanı temizlemek ve inceltmek için kullanılır.
    Açıklama: Kimyasal ilaçlarla (dimenhydrinat) ve Zencefil tozu ile ayrı ayrı gruplarla kinesiya hastaları üzerinde yapılan deney ve test sonuçlarından Zencefil tozunun hiçbir yan tesirinin olmadığı ve hastaları iyileştirdiği oysa kimyasal ilaçların hastaların merkezi sinir sistemine zarar verdiği görülmüştür.

    Çayı: Bir kahve kaşığı ince kıyılmış Zencefil kökü demliğe konur. Üzerine 300-400ml kaynar su ilave edilerek 8-10dk demlenmeye bırakıldıktan sonra süzülerek içilir. Zencefil kökü çok acıdır. Bu nedenle genellikle diğer şifalı bitkilerle karıştırılarak çay harmanı yapılır.

    Çay Harmanları:

    Gökçek Kineisya (seyahat hastalığı) çayı;
    50g Zencefil kökü
    40g Nane yaprağı
    10g Lavanta çiçeği
    Gökçek İştah çayı (iştahsızlık, tıkanma ve şişkinlik);
    30g Zencefil kökü
    30g Çentiyan kökü
    30g Pelin otu
    20g Kantaronotu
    Gökçek İştah çayı (hazımsızlık, şişkinlik ve tıkanmagibi ve iştahsızlık);
    30g Melek otu kökü
    30g Pelin otu
    20g Çentiyan kökü
    20g Kantaronotu

    Gökçek Hazım çayı (şişkinlik, tıkanma ve iştahsızlık);
    20g Papatya çiçeği
    20g Kantaron otu
    20g Zencefil kökü
    20g Kimyon tohumu
    20g Rezene tohumu

    Gökçek Sinir ve uyku çayı (sinirsel nedenlerle uyuyama);
    30g Kılıç otu
    20g Kedi otu kökü
    20g Oğul otu yaprağı
    20g Kakule
    10g Zencefil

    Gökçekgip çayı I;
    30g Ekinezya
    20g Mürver çiçeği
    20g Ihlamur çiçeği
    15g Zencefil kökü
    15ggip otu

    Gökçekgip çayı II;
    30g Ekinezya
    20g Ihlamur çiçeği
    20g Zencefil
    15g Mürver çiçeği
    15ggip otu

    Gökçek Öksürük çayı;
    30g Zencefil
    20g Sabun otu kökü
    20g Sinirli ot
    15g Calba çiçeği
    15ggip otu

    Gökçek Üşütme çayı;
    25g Zencefil
    15g Ihlamur çiçeği
    15g Papatya çiçeği
    15g Ebegömeci çiçeği
    15g Kuşburnu
    15ggip otu

    Gökçek enfeksiyonal ve ateşligip çayı;
    30g Zencefil
    20g Mürver çiçeği
    20g Ihlamur çiçeği
    15g Söğüt kabuğu
    15ggip otu

    Gökçek Terleme çayı;
    40g Zencefil
    20g Mürver çiçeği
    20g Ihlamur çiçeği
    10ggrip otu
    10g Papatya çiçeği

    Gip Çayı (Ateşli Üşütme hastalıklarında);
    30g Zencefil
    20g Söğüt kabuğu
    20g Mürver Çiçeği
    10g Ihlamur Çiçeği
    10g Keçi sakalı Çiçeği
    10ggipotu

    Gökçek Ateşli Hastalıklar Çayı
    30g Zencefil
    20g Söğüt kabuğu
    20g Civanperçemi otu
    10ggipotu
    10g Kantaron otu
    10g Çentiyan kökü

    Gip Çayı
    30g Zencefil
    20g Ihlamur Çiçeği
    20g Söğüt kabuğu
    10g Keçi sakalı Çiçeği
    10g Papatya Çiçeği
    10ggipotu

    Baharatı: Zencefil kökünden elde edilen toz veya eter yağı pasta, çorba, sulu yemekler, etli yemeklere aroma ve tat verici olarak katılır.
    Araştırmalar: Zencefil kökü su buharı damıtması (destilasyon) ile elde edilir. Yukarıdaki rahatsızlıklara karşı kullanıldığı gibi kas krampları, bel ağrısı, sinirsel ağrı ve iltihaplar, sindirim bozuklukları ve yorgunluğa karşı kullanılır. Ayrıca parfüm, baharat ve soslara da katılır.
    Homeopati’de: Zencefil kökünden 20gr ince kıyıldıktan sonra bir şişeye konur ve üzerine 80ml %70’lik Alkol ilave edilerek 4-6hafta bekletilir. Sonra süzülerek Homeopati’de ismi ile anılan tentür elde edilir. Bu tentürden günde 3-5defa 10-15damla alınır.
    Hastalığın belirtileri (semptom): 1) Mide ağır, sanki taş doluymuş gibi 2) Başa kan hücumu nedeniyle baş ağrısı ve migren 3) Baş ağırmış gibi hissedilmesi 4) Eğilince başın içi yere düşecekmiş gibi hissedilmesi 5) Astım ve gırtlak altı yanması 6) Burun kuru hissedilir ve tıkanıksa 7) Burunda kaşıntı olursaBu gibi hallerde Zencefil tentürü kullanılır.
    Yan tesirleri: Bilinen bir yan tesiri yoktur fakat acı olması nedeniyle fazla kullanılamaz.

  • #2
    Baharat olarak kullanılan bitkilerden ekstrakte edilen esansiyel yağların flukonazole dirençli ve flukonazole duyarlı Candida spp'ye karşı in vitro etkinliği

    Patrícia Pozzatti 1, Liliane Alves Scheid , Tatyana Borba Spader , Margareth Linde Atayde , Janio Morais Santurio , Sidney Hartz Alves
    üyelikler yıkılmak üyelik
    • 1Mikrobiyoloji ve Parazitoloji Bölümü, Mikoloji Bölümü, Universidade Federal de Santa Maria, Santa Maria, RS 97105-900, Brezilya.
    Soyut


    Bu çalışmada, baharat olarak kullanılan bitkilerden elde edilen seçilmiş uçucu yağların antifungal aktivitesi, hem flukonazole dirençli hem de flukonazole duyarlı Candida spp.'ye karşı değerlendirildi. İncelenen Candida türleri, Candida albicans, Candida dubliniensis, Candida tropicalis, Candida glabrata ve Candida krusei idi. Karşılaştırma amacıyla C. albicans, C. dubliniensis ve Candida non-albicans olarak gruplara ayrıldılar. Uçucu yağlar Cinnamomum zeylanicum Breyn, Lippia graveolens HBK, Ocimum basilicum L., Origanum vulgare L., Rosmarinus officinalis L., Salvia officinalis L., Thymus vulgaris L. ve Zingiber officinale'den elde edildi. Duyarlılık testleri M27-A2 metodolojisine dayalıdır. Uçucu yağların kimyasal bileşimi, gaz kromatografisi-kütle spektroskopisi ve tutma indeksleri ile elde edildi. Sonuçlar, tarçın, Meksika kekiği, kekik, kekik ve zencefil esansiyel yağlarının farklı seviyelerde antifungal aktiviteye sahip olduğunu gösterdi. Kekik ve zencefil esansiyel yağlarının sırasıyla en fazla ve en az etkili olduğu bulundu. Ana bulgu, flukonazol dirençli C. albicans, C. dubliniensis ve Candida non-albicans'ın Meksika kekik, kekik, kekik ve zencefil esansiyel yağlarına duyarlılıklarının flukonazol duyarlı mayalardan daha yüksek olmasıdır (P<0.05). ). Buna karşılık, flukonazole dirençli C. albicans ve Candida non-albicans, flukonazole duyarlı muadillerine göre tarçın esansiyel yağına karşı daha az duyarlıydı (P<0.05). Mayalar arasındaki ilişki Çalışılan uçucu yağların duyarlılıkları ve kimyasal bileşimleri, bu 2 parametre karşılaştırıldığında belirgindi. Son olarak, fesleğen, biberiye ve adaçayı esansiyel yağları, test edilen konsantrasyonlarda Candida izolatlarına karşı antifungal aktivite göstermemiştir.
    .................................................. ...........................................

    Zencefilin Faydaları Nelerdir?


    Zencefil, düzenli tüketilmesi halinde hazımsızlıktan kalp sağlığına kadar birçok sağlık sorunun rahatlatılmasına katkıda bulunabilir.


    Yazı İçeriği Zencefilin Faydaları

    Zencefilin Yan Etkileri Nelerdir?

    Zencefil Nasıl Tüketilir?

    Zencefil Çayının Faydaları

    Zencefil Nedir?


    İnsan sağlığına katkıları farklı araştırmalarla da desteklenen zencefil ülkemizde de popülerliği artan besinlerden biri. Geçmişi binlerce yıla uzanan bu bitkinin kökü geleneksel tıpta da sıklıkla kullanılır.

    Latince ismi Zingiber Officinale olan zencefil Asya’nın tropik iklim kuşağı altındaki bölgelerinde yetişir ve bolca tüketilir. Mutfaklarda ağırlıklı olarak baharat olarak kullanılan zencefilin çayı da yaygın olarak tüketilir. İnsanlık tarihindeki geçmişi uzun yıllara dayanan bu bitkinin insan sağlığına olası katkılarını şöyle sıralayabiliriz: Zencefilin Faydaları

    Hazımsızlığa İyi Gelebilir
    Birçok kişinin özellikle yemeklerden sonra yaşadığı hazımsızlığa karşı iyi gelebilen zencefil yaşanan ağrı ve rahatsızlığı rahatlatabilir. Zencefilin bu özelliği midedeki besinlerin boşalma sürecini kısaltmasından kaynaklanır. Bu durum, yapılan araştırmalarla da desteklenmiştir ve zencefil tüketiminin mide boşalma süresini yaklaşık yüzde 30 oranında hızlandırdığı ölçülmüştür.

    Ağrılara İyi Gelebilir
    Zencefilin yapısında gingerol adlı bir biyoaktif bileşik bulunur. Bu bileşik sayesinde zencefil, iltihabı azaltarak ağrı kesici etki gösterir. Bu etki özellikle taze zencefilde daha güçlüdür. Bir araştırmada taze zencefilin egzersiz sonrası yaşanan kas ağrılarını yaklaşık yüzde 25 oranında azalttığı ölçülmüştür. Zencefil tüketiminin kadınların adet ağrılarını azaltmada etkili olduğu da araştırmalarla tespit edilmiştir.

    Beyin Sağlığına Katkıda Bulunabilir
    Zencefil, yapısında bulunan antioksidanlar ve bileşikler sayesinde yaşlanmayla ortaya çıkan bilişsel sorunların giderilmesine katkıda bulunabilir. Beyin fonksiyonlarının gelişmesine yarayan zencefilin hafıza üzerinde de olumlu etkileri olduğu düşünülmektedir. 2012 yılında orta yaş grubundaki kadınlar üzerinde yapılan bir çalışma zencefilin bu katkılarını desteklemektedir.

    Kanser Riskini Azaltabilir
    Zencefilin güçlü antioksidan etkisi stresi azaltmada etkilidir. Stres ise vücuttaki toksik maddeler olan serbest radikallerin birikimini artırır. Serbest radikaller, kanser dahil olmak üzere birçok rahatsızlığa neden olabilir. Zencefil tüketimi vücudun serbest radikallerden kurtulmasına katkıda bulunarak kansere yakalanma ihtimalini azaltabilir. 2013 yılında yapılan bir araştırma ile kolorektal kanser riski taşıyan kişilere düzenli olarak zencefil verildi ve bu sürecin ardından deneklerin kolorektal yapısındaki olumsuzlukların azaldığı görüldü. Zencefilin bu olumlu etkilerinin yine yapısında bulunan gingerolden kaynaklandığı öngörülmektedir. Kolorektal kanserlerin dışında zencefilin mide-bağırsak, meme ve yumurtalık kanserlerinde de etkili olduğu düşünülmektedir. Kanser hastalarının zencefil tüketmeden önce hekimlerine danışmaları önerilir.

    Kan Şekerinin Düzenlenmesine Katkıda Bulunabilir
    Zencefilin yapısındaki gingerolün sağlığımıza bir diğer katkısı ise kan şekerinin dengelenmesine olan katkısıdır. Zencefilin Tip 2 diyabet üzerindeki olumlu etkileri 2015 yılında yapılan bir araştırma ile de desteklendi. Bu çalışmada Tip 2 diyabet sorunu olan 41 kişiye düzenli olarak zencefil tozu verildi. Araştırmanın sonuçlarına göre açlık kan şekerinde yüzde 12 oranında düşüş görüldü.

    Kilo Vermeye Destek Olabilir
    Düzenli olarak tüketilmesi halinde zencefil kilo vermeye de yardımcı olabilir. Bilindiği üzere diyabete sıklıkla yüksek kilo eşlik eder. 2016 ve 2019 yıllarında yapılan iki araştırma zencefilin kilo vermede etkili olabileceğini ortaya koymuştur. 2016 yılında obezite sorunu olan kadın hastalarla yapılan çalışmanın sonuçlarına göre zencefil hem vücut kitle endeksinin dengelenmesine hem de kan şekeri seviyesinin düşmesine katkıda bulunabilir. 2019 yılında yapılan araştırmanın sonuçlarına göre ise zencefil kilolu insanlarda yağ miktarının ve bel-kalça ölçülerinin azalmasına katkıda bulunabilmektedir. Zencefilin zayıflamaya yönelik etkilerinin enerji harcamasını artırmasından ve vücuttaki iltihabı azaltmasından kaynaklandığı düşünülmektedir.

    Mide Bulantısına İyi Gelebilir
    Mide bulantılarına olumlu etkileri olan zencefil özellikle hamilelikte yaşanan mide bulantılarını hafifletebilir. Düzenli alınan zencefilin hamilelik sürecinde yaşanan mide bulantılarını azalttığı araştırmalarla da desteklenmiştir. Hamilelik süreci kadın sağlığı üzerinde pek çok değişikliğe neden olabileceği için hamilelerin bulantıya karşı zencefil tüketmeye başlamadan önce doktorlarına danışmaları önerilir. Zencefil, ameliyatlar sonrasında görülen mide bulantılarını da azaltabilir.

    Kolesterolü Düşürebilir
    Düzenli zencefil tüketimi kolesterolün düşmesine olumlu katkılarda bulunabilir. Yüksek kolesterol kalp sağlığı üzerinde olumsuz etkilere neden olduğu için zencefilin kalp sağlığı üzerinde de olumlu etkileri bulunur. Özellikle kötü kolesterol olarak da adlandırılan LDL’nin kalp sağlığına zararları vardır ve zencefil tüketimi kötü kolesterolün düşürülmesinde de etkilidir.

    Zencefilin Yan Etkileri Nelerdir?

    Zencefilin küçük miktarlarda tüketilmesi halinde önemli yan etkileri yoktur. Günlük 5 gramın üzerindeki tüketimi yan etkilerin ortaya çıkmasına neden olabilir. Zencefilin olası yan etkileri şöyle sıralanabilir:
    • Ağızda tahriş,
    • Mide sorunları ve bulantı,
    • Gaz,
    • Tansiyon düşüklüğü,
    • Kan sulandırması nedeniyle kanama sorunu.

    Zencefil tüketimi, kullanılan ilaçlara bağlı olarak farklı etkileşimlere neden olabilir. Bu nedenle ilaç kullanıyorsanız zencefil tüketimi konusunu doktorunuza danışmalısınız.

    Zencefil Nasıl Tüketilir?

    Zencefil, baharat olarak, çayı demlenerek ve toz halinde tüketilir. Taze haliyle tüketilmesi faydalarını artırır. Tavuk ve balık yemeklerine özellikle yakışan zencefil damak tadına göre farklı yemeklerde de kullanılabilir.

    Zencefil Çayının Faydaları

    Zencefil çayı faydaları, taze zencefilin faydaları ya da diğer tüketim şekillerinden elde edilen faydalara benzer şekildedir. Zencefil çayı hazırlamak için taze zencefili rendeleyerek ya da halkalar halinde doğrayarak kaynayan suya koyun. Ocakta 10 dakika tuttuktan sonra içime hazır hale gelir. İçmeden önce bal, limon, tarçın koyarak tadında değişiklikler yapabilirsiniz. Zencefil çayı haricinde zencefille farklı içecekler hazırlayabilirsiniz. Bunlardan biri de zencefilli kokteyl.

    .................................................. .................................................. .................................................. ..............

    Zencefilin Faydaları Nelerdir? Zencefil Nasıl Tüketilir?

    Bitkisel tedaviler yüzyıllardır alternatif tıbbın bir parçası olarak kullanılıyor. Son yıllarda bitkilerin sağlık üzerine faydaları tüm dünyada daha fazla dikkat çekmeye başladı. Zencefil de sağlığa faydaları bilinen lezzetli bir bitkidir.

    İçindekiler
    • Zencefil Nedir?
    • Zencefilin Faydaları Nelerdir?
    • Zencefil Çayı Nasıl Yapılır?
    • Zencefil Nasıl Tüketilir?
    • Zencefili Kimler Kullanamaz
    • Zencefil Neye İyi gelir?
    • Zencefilin Yan Etkileri Nelerdir?
    • Zencefil Nerelerde Kullanılır?
    • Zencefilde Hangi Vitaminler Var?
    • Zencefil Ne Kadar Tüketilmelidir?
    • Zencefil Nasıl Seçilir ve Saklanır?
    Zencefil Nedir?

    Zencefil kakule ve zerdeçalın içinde olduğu bir bitki ailesine mensuptur. Zencefil bitkisi zingiberaceae familyasına aittir. Temel olarak kökleri tüketilir. Zencefilin esas olarak faydalı olan bileşeni gingerollardır. Zencefilin geleneksel/alternatif tıpta kullanımı çok eskiye dayanmaktadır. Hintlilerin ve Çinlilerin 5000 yıldan fazladır zencefil kökü kullandıklarına inanılıyor. Şu anda zencefilin en büyük üreticisi Hindistan’dır.

    Zencefilin Faydaları Nelerdir?

    Zencefilin faydaları saymakla bitmez. Zencefil yüzyıllardır mide rahatsızlıkları, artrit, astım ve diyabet gibi pek çok hastalığın tedavisinde geleneksel olarak kullanılmaktadır. Zencefil güçlü antioksidan ve antienflamatuar (iltihabı önleyici) özelliklere sahiptir. Vücuttaki oksidatif reaksiyonlar sonucu serbest oksijen radikalleri ortaya çıkmaktadır.

    Zencefilin içindeki aktif bileşenler serbest oksijen radikallerinin vücuda verdiği zararı azaltarak antioksidan etki gösterir.Zencefilin iltihabı, ağrıyı ve şişmeyi azalttığı gözlemlenmiştir. Bu nedenle zencefilin osteoartrit, iltihaplanmaya ve romatizmaya karşı etkili olduğu iddia edilmektedir.Zencefilin yüzyıllar boyunca en önemli kullanım alanlarından biri mide bulantısı ve kusmayı hafifletmek olmuştur. Bu konuda yapılan pek çok bilimsel çalışma bu kullanım şeklini desteklemektedir. Zencefilin mide boşalmasını hızlandırarak bulantı azaltıcı etki gösterdiği düşünülmektedir.

    Zencefilin özellikle deniz ve taşıt tutmasında etkili olduğu gösterilmiştir. Aynı zamanda hamilelikte olan bulantı-kusmalar, kanser tedavisi sırasında görülen bulantılar ve cerrahi işlemler sonrası olan bulantılar için zencefil kullanılması önerilmektedir. Yapılan çalışmalar hamilelikte zencefil kullanımının güvenli olduğunu göstermiştir. Ancak yine de hamilelerin bu ürünü kullanmadan önce hekime danışmaları önerilir. Yapılan insan ve hayvan çalışmalarında zencefilin kanser hücrelerinin çoğalmasına engel olduğuna dair kanıtlar elde edilmiştir. Zencefilin bağırsak, karaciğer, pankreas, yumurtalık ve meme kanseri üzerindeki etkileri araştırılmaktadır. Bu konudaki çalışmalar devam etmektedir.Zencefil ile ilgili olarak yapılan hayvan deneylerinde kalp hastalıklarına karşı koruyucu etkisi olduğu gösterilmiştir. Zencefilin antiinflamatuvar, antioksidan, pıhtılaşmayı önleyici, tansiyonu düşürücü etki göstererek ve kan yağlarını azaltarak kalp-damar sağlığı üzerine faydalı olduğu düşünülmektedir. Bu konuda insanlar üzerinde yapılmış daha fazla çalışmaya ihtiyaç vardır.Astım bronş düz kaslarında kasılma ile giden ve yaygın görülen bir hastalıktır.

    Zencefil yüzyıllardır solunum sistemi hastalıklarının tedavisinde kullanılmaktadır. Zencefilin alerjik reaksiyonları baskılayarak astımlı hastalarda faydalı olduğu düşünülmektedir.Zencefil ile ilgili yapılan çalışmalarda kan şekerini düşürdüğüne dair kanıtlar vardır. Zencefilin açlık kan şekerini düşürmede etkili olmadığı uzun vadede kan şekerini düşürücü etkiye sahip olduğu gösterilmiştir. Bu nedenle diyabetik hastalarda kullanılmasının faydalı olduğu düşünülmektedir. Zencefil mide boşalmasını hızlandırmakta ve bu şekilde hazımsızlık durumlarında faydalı olmaktadır.Adet döngüsü sırasında ağrı olmasına dismenore denir. Zencefil dismenoreli kadınlarda denenmiş ve ağrı kesiciler kadar ağrı üzerinde etkili olduğu gözlenmiştir.Yapılan bazı çalışmalarda yüksek doz zencefil kullananlarda kandaki kötü huylu yağ olan LDL nin azaldığı gözlenmiştir. Bilindiği üzere oksidatif stres ve oluşan metabolitler yaşlanmayı hızlandırmaktadır. Yapılan hayvan deneylerinde zencefilin yaşlanmaya bağlı beyin fonksiyonlarında gerilemeyi azalttığı görülmüştür. Bu çalışmalar zencefilin Alzheimer hastaları için faydalı olacağına dair umut ışığı doğurmaktadır.Zencefilin antimikrobiyal etkisi iyi bilinmektedir. Özellikle diş eti enfeksiyonlarında iyileştirici etkisi vardır. Zencefil özütünün pek çok bakterinin çoğalmasına engel olduğu düşünülmektedir. Taze zencefilin insan solunum yolu virüsü olan RSV’ye karşı etkili olduğu gösterilmiştir. Taze zencefil faydaları kuru olana göre daha fazladır. Zencefilin yararları araştırılmaya devam etmektedir.

    Zencefil Çayı Nasıl Yapılır?

    Yüksek dozlara çıkmadıktan sonra zencefil çayı içmenin güvenli olduğu düşünülmektedir. Günde 1-2 fincandan fazla tüketmeyi düşünüyorsanız ve özellikle ilaç kullanıyorsanız hekiminize danışmanızda fayda var. Zencefil çayının faydaları taze zencefil kullanmaya benzerdir. Her gün 1 fincan zencefil çayı sindirim sistemini rahatlatır. Hazımsızlığa iyi gelir.Gelelim zencefil çayını nasıl hazırlayacağımıza:
    • Kök zencefil alınır, iyice temizlenir, dilerseniz kabuğunu soyabilirsiniz. Daha sonra ince ince dilimleyin.
    • Hazırlamak istediğiniz miktarda suyu fincanla demliğe koyun ve içine zencefil dilimlerini yerleştirin. Bir fincan çay için 2-3 dilim zencefil koymak uygundur.
    • Suyu 5-10 dakika kadar kaynatın. Daha sonra süzün.
    • Dilerseniz limon veya bal ilave ederek tüketebilirsiniz.
    Zencefil Nasıl Tüketilir?

    ‘’Zencefil nasıl kullanılır? sorusu sıklıkla akıllara takılır. Zencefil çay olarak, toz halinde ve taze olarak tüketilebilir. Zencefilin faydalı bileşenleri en fazla taze kök formunda bulunur. Peki zencefil nasıl tüketilmeli? Zencefili çay olarak tüketebileceğiniz gibi, kek ve kurabiyelere, yemek ve çorbalara ekleyerek de kullanabilirsiniz. Zencefilli kurabiye, zencefilli portakallı tavuk, zencefilli pilav bunlara örnek olarak gösterilebilir.

    Zencefili Kimler Kullanamaz
    • Zencefil çayı 2 yaş altındaki çocuklar için uygun değildir.
    • Zencefilin kan sulandırıcı etkisi vardır. Bu nedenle kan sulandırıcı ilaç kullananlar bu bitkiyi kullanmadan önce hekime danışılmalıdır.
    • Zencefil tansiyonu düşürür. Tansiyon hastası iseniz ve ilaç kullanıyorsanız zencefil kullanmadan önce hekiminizle görüşünüz.
    • Zencefilin hamileler üzerinde bilinen bir yan etkisi gösterilmemiştir. Buna rağmen hamileler kullanmadan önce hekime danışılmalıdır.
    • Bir hastalık durumunda hekiminizin vereceği ilaç tedavisi yerine kullanılmamalıdır.
    Zencefil Neye İyi gelir?
    • Hamilelikte olan mide bulantısı
    • Taşıt ve deniz tutması durumunda
    • Kemoterapi sonrası mide bulantılarında
    • Hazımsızlık durumunda
    • Demans ve Alzheimer hastalarında beyin hasarını azaltmak için
    • Şeker hastalarında kan şekerini düşürüp insülin miktarını artırmak için
    • Yüksek tansiyon hastalarında tansiyonu düşürmek için
    • Kötü huylu kan yağlarını azaltmak için
    • Astımlı hastalarda alerjiyi azaltmak için
    • Adet sancısını azaltmak için
    • Kanser hastalarında hekim gözetiminde ve tedaviye yardımcı olmak için zencefil kullanılabilir.
    Zencefilin Yan Etkileri Nelerdir?

    Zencefil trombositlerin pıhtılaşmasını azaltır bu nedenle kan inceltici etkisi vardır. Kanamaya meyilli insanlarda fazla zencefil tüketimi kanamaya neden olabilir. Hipotansiyon (kan basıncı düşüklüğü) yaşayan insanlarda tansiyonu daha fazla düşürebilir ve halsizliğe yol açabilir.

    Zencefil Nerelerde Kullanılır?

    Hamilelerin ilk aylarında olan mide bulantılarında, deniz ve taşıt tutmasında, kilo vermeye yardımcı olarak, yüksek tansiyonu düşürmek için, şeker hastalarında yardımcı olarak, kanser hastalarında tedaviye ilave olarak kullanılabilir.

    Zencefilde Hangi Vitaminler Var?

    Yapılan çalışmalarla taze ve kuru zencefilin 115 bileşenden oluştuğu ortaya çıkarılmıştır. Zencefilin ana faydalı bileşeni olan gingeroller taze zencefilde kuru olana göre daha fazla bulunur. 1 çay kaşığı kuru zencefilde, 6 cal, 1 gramdan az yağ, 0 protein, 1 gr karbonhidrat ve 1 gramdan az lif bulunur. Kuru zencefilde ayrıca çok az demir vardır.Yarım fincan kadar taze zencefilde; 19 kalori, 1 gramdan az protein, yağ ve lif, 4 gram karbonhidrat vardır. Taze zencefil C vitamini ve demir içerir.

    Zencefil Ne Kadar Tüketilmelidir?

    Zencefil faydalı ve lezzetli bir baharattır ancak önerilenden fazla kullanmak sakıncalı olabilir. Zencefil çayı için önerilen miktar günde 1 veya 2 fincandır. Herhangi bir biçimde günde 4 gramdan fazla zencefil tüketimi önerilmez.

    Zencefil Nasıl Seçilir ve Saklanır?

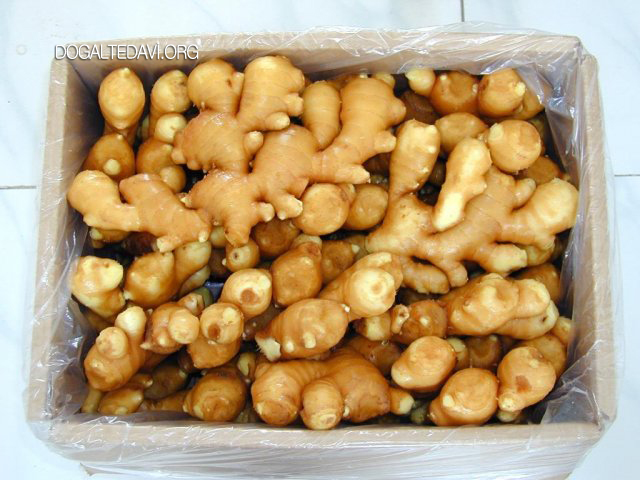
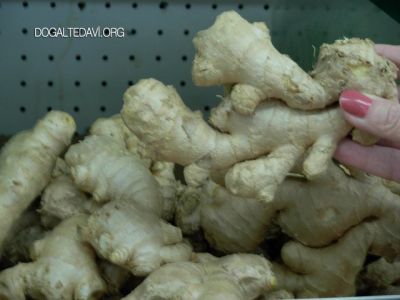
    Mümkünse toz zencefil yerine taze olanı tercih edilmelidir. Taze zencefil daha fazla gingerol ve antienflamatuar içerir. Taze zencefil marketlerde ve pazarlarda satılmaktadır. Taze zencefil alırken köklerin sert, pürüzsüz ve küfsüz olmasına dikkat edin. Kuru zencefil genellikle marketlerde ve baharatçılarda bulunur. Aldığınız kuru zencefilin taze olduğundan emin olmalısınız. Taze zencefili soyulmadan 3 haftaya kadar buzdolabında saklayabilirsiniz. Derin dondurucuda soyulmadan 6 hafta saklanabilir. Kuru zencefilin nem almamasına dikkat edin. Kuru zencefili cam kavanozda, kuru ve serin bir yerde muhafaza edin.

    Geleneksel tıp uygulamaları kapsamında birçok bitki günümüzde de kullanılmaya devam etmektedir. Bu bitkilerin kullanımının sizin için uygun olup olmadığı hakkında sağlık kuruluşlarına başvurarak uzman hekimlerden destek alabilirsiniz.

    Yorum yap


    • #3
      [6]-Gingerol Kaspaz Bağımlı Apoptozu İndükler ve MAPK/AP-1 Sinyalini Engelleyerek Kolon Kanseri Hücrelerinde PMA'nın İndüklediği Proliferasyonu Önler

      EK Radhakrishnan , # 1 Smitha V. Bava , # 2 Sai Shyam Narayanan , 2 , Lekshmi R. Nath , 2 , Arun Kumar T. Thulasidasan , 2 Eppurathu Vasudevan Soniya , 1 , * ve Ruby John Anto 2 , *
      Rana Pratap Singh, Editör
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      1 Bitki Moleküler Biyolojisi Bölümü, Rajiv Gandhi Biyoteknoloji Merkezi, Thiruvananthapuram, Kerala, Hindistan
      2 Kanser Araştırmaları Bölümü, Rajiv Gandhi Biyoteknoloji Merkezi, Thiruvananthapuram, Kerala, Hindistan
      Jawaharlal Nehru Üniversitesi, Hindistan
      # Eşit katkıda bulundu.
      * E-posta: ni.ser.bcgr@ayinosve (EVS); ni.ser.bcgr@otnajr (RJA)
      İlişkili Veriler

      Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
      Git: Soyut


      Tıbbi bitki Ginger'ın ( Zingiber officinale ) ana aktif prensibi olan [6]-gingerol'ün antikanser ve kemopreventif etkinliği için mekanizmaya dayalı kanıtlar sunuyoruz.), kolon kanseri hücrelerinde. Bileşik, sitotoksik etkisi açısından iki insan kolon kanseri hücre hattında değerlendirildi ve en hassas hücre hattı olan SW-480, antikanser ve kemopreventif etkinliğinin mekanik değerlendirmesi için seçildi. [6]-gingerol'ün toksik olmayan doğası, hızla bölünen normal fare kolon hücreleri üzerinde canlılık deneyleri ile doğrulandı. [6]-gingerol, normal kolon hücreleri etkilenmezken SW-480'de fosfatidil serinin dışsallaştırılmasıyla kanıtlandığı gibi hücre proliferasyonunu inhibe etti ve apoptozu indükledi. SW-480 hücrelerinde [6]-gingerol'e duyarlılık, kaspaz 8, 9, 3 ve 7'nin aktivasyonu ve apoptotik hücre ölümünün indüklenmesini kanıtlayan PARP bölünmesiyle ilişkilendirildi. mekanik olarak, [6]-gingerol aşağı regüle edilmiş Phorbol Myristate Acetate (PMA), ERK1/2 ve JNK MAP kinazların fosforilasyonunu ve AP-1 transkripsiyon faktörünün aktivasyonunu indükledi, ancak p38 MAP kinazın fosforilasyonu ve NF-kappa'nın aktivasyonu üzerinde çok az etkisi oldu. B. Ek olarak, SW-480 hücrelerinde PMA kaynaklı hücre proliferasyonunu düşürmede ERK1/2 veya JNK MAP kinaz inhibitörlerini tamamladı. ERK1/2/JNK/AP-1 yolunun inhibisyonunu, antikanserin arkasındaki olası bir mekanizma ve [6]-gingerol'ün kolon kanserine karşı kemopreventif etkinliği olarak rapor ediyoruz.

      Git: Giriş


      Kolon kanseri, Amerika Birleşik Devletleri'nde en çok teşhis edilen üçüncü kanser türüdür ve kansere bağlı ölümlerin üçüncü önde gelen nedenidir. Küresel olarak, kansere bağlı ölümlerin dördüncü en yaygın nedenidir. Diyet modelindeki farklılıklar ve kırmızı ve işlenmiş et tüketimindeki artış, kolon kanseri insidansındaki bu artışa katkıda bulunur [1] , [2] . Cerrahi prosedürler ve kemoterapi, kolon kanseri için başlıca terapötik rejimleri oluşturur [3] . İlaç direncindeki artış, kolon kanserinin tedavisini zorlaştırmakta ve metastaza bağlı sorunlar şiddetini artırmaktadır. Büyümesini ve metastazını durdurmak için kolon kanserinde moleküler sinyal yollarını hedefleyen yeni terapötik ajanlar için araştırma devam etmektedir.

      Zencefil ( Zingiber officinale ) geleneksel tıpta uzun süredir kullanılmaktadır ve Ayurveda'da " büyük ilaç " anlamına gelen " Maha-aushadhi " olarak adlandırılmaktadır [4] . Zencefil köksapı, [6]-gingerol, [6]-shagol, [6]-paradol ve zingerone [5] gibi birçok keskin fenolik bileşik içerir. Bu bileşikler, anti-bakteriyel, anti-oksidan, anti- enflamatuar ve anti-tümör özellikler [6] , [7]. Birçok çalışma, bu fenoliklerin çeşitli orijinli kanserlere karşı anti-kanser özelliklerini kanıtlamıştır. Zencefil köksapı, birçok ülkede günlük diyetlerin bir bileşenidir ve hazımsızlık ve diğer gastrointestinal bozukluklar dahil olmak üzere birçok rahatsızlığı yönetmek için Doğu tıbbı ve Ayurveda gibi birçok geleneksel bitkisel ilaç sisteminde aktif bir bileşendir. Bu geleneksel bilgi, kolorektal kanser veya pankreas kanseri gibi mide kanserlerine karşı bu fenoliklerin kemo-önleyici ve kanser önleyici doğasını karakterize etme konusunda özel bir ilgi uyandırır.

      Bu fenolik bileşikler arasında, [6]-gingerol (1-[4'-hidroksi-3'-metoksifenil]-5-hidroksi-3-dekanon), kolorektal kanser de dahil olmak üzere çeşitli kanser hücre hatlarında sitotoksik etkileri açısından incelenmiştir. [6]-gingerol'ün, kaspaz-3'e bağlı apoptoz ve otofaji ile servikal kanser hücre dizisi HeLa'da hücre ölümünü indüklediği gösterilmiştir [8] . MDA-MB-231 meme kanseri hücrelerinin metastazını inhibe edebilir ve LNCaP prostat kanseri hücrelerinde apoptozu indükleyebilir [9] , [10] . [6]-gingerol uygulaması, tümör infiltre eden lenfositler CD4 ve CD8 T-hücreleri ve B220 + B-hücrelerinin infiltrasyonunu artırarak, melanomlar, renal hücreli karsinomlar ve kolon karsinomları gibi çeşitli fare tümörlerinin büyümesini inhibe etti [11]. [6]-gingerol'ün ICR farelerinde forbol ester kaynaklı deri tümörünün ilerlemesini inhibe ettiği de gösterilmiştir [12] . [6]-gingerol'ün anti-kanser özellikleri ve bunun kolon kanserine karşı etki mekanizması hakkında sadece sınırlı sayıda çalışma yayınlanmıştır [13] , [14] , [15] .

      Bu çalışmada, [6]-gingerol'ün SW-480 kolon kanseri hücreleri üzerindeki sitotoksik etkileri, fareden alınan hızla bölünen normal bağırsak epitel hücreleri üzerindeki etkileri ile karşılaştırıldı. Çalışma ayrıca , [6]-gingerol'ün SW-480 hücrelerinde forbol 12-miristat 13-asetat (PMA) ile indüklenen anti-apoptotik sinyaller üzerindeki inhibitör etkileri üzerinde bir in vitro mekanik değerlendirme gerçekleştirdi.

      Git: Malzemeler ve yöntemler

      2.1. Malzemeler


      Dulbecco'nun değiştirilmiş Eagle ortamı (DMEM), Life Technologies'den (Grand Island, NY, ABD) elde edildi; PAN Biotech'ten (GmbH, Aidenbach, Almanya) fetal sığır serumu (FBS); Invitrogen'den Hank Dengeli Tuz Solüsyonu (HBSS), Epidermal Büyüme Faktörü (EGF) ve İnsülin, Transferrin, Selenyum, Sodyum Piruvat solüsyonu (ITS-A); Fosfo-p38, fosfo-ERK1/2, fosfo-JNK, beta-aktin ve kaspazlara karşı antikorlar, Cell Signaling'den (Beverly, MA, ABD) ve poli ADP riboz polimerazına (PARP) karşı antikorlar, Santa Cruz Biotechnology'den (Santa) satın alınmıştır. Cruz, CA). [6]-gingerol, Biomol'den (Hamburg, Almanya) satın alınmıştır. MAP kinaz inhibitörleri U0126, SP600125, SB203580 ve NF-kappaB inhibitörü SN50, Calbiochem'den (San Diego, CA) temin edildi. Diğer tüm kimyasallar, 2.2. Hücre kültürü


      İnsan kolon kanseri hücre hatları, SW-480 ve HCT116, Ulusal Hücre Bilimleri Merkezi'nden (NCCS), Pune, Hindistan'dan elde edildi. Hücreler, 100 U/ml penisilin, 50 mikrogram/ml streptomisin ve 1 mikrogram/ml amfoterisin B ile birlikte %10 Fetal Sığır Serumu (FBS) ile takviye edilmiş Dulbecco's Modifiye Eagle's Medium (DMEM) içinde kültürlendi. Hücre çizgileri, 37°C'de tutuldu. %5 CO2'lik nemlendirilmiş bir atmosferde °C'de ve haftada iki kez alt kültürlendi.

      Normal intestinal epitelyal hücreler (IEC'ler) fare kolonundan yerleşik protokole göre [16] , [17] izole edildi ve uygun modifikasyonlarla Rajiv Gandhi Biyoteknoloji Merkezi'nin Kurumsal Hayvan Etik Komitesi tarafından Komite kurallarına göre onaylandı . Hayvanlar Üzerinde Yapılan Deneylerin Kontrol ve Denetiminin Amacı , Çevre ve Orman Bakanlığı, Hindistan Hükümeti (Yaptırım No: IAEC/151/RUBY/2012). Kısaca fare ( İsviçre albino, 7 haftalık, IAEC yaptırımı No: IAEC/151/RUBY/2012) kolon diseke edilerek çıkarıldı ve dışkı maddesini uzaklaştırmak için 1× Hank's Balanced Salt Solution (HBSS) ile aseptik olarak temizlendi. Bağırsak uzunlamasına açıldı ve 1 cm'lik parçalar halinde kesildi ve kuvvetli çalkalama ile 30 dakika boyunca tip 1 kollajenaz (200 U/ml) varlığında inkübe edildi. Yerinden çıkan epitel hücreleri, süpernatan santrifüj edilerek izole edildi. Bu hücreler, 10 ng/ml epidermal büyüme faktörü (EGF) ve 5 ug/ml İnsülin-Transferrin-Selenyum-Sodyum Piruvat (ITS-A) (Invitrogen, ABD) içeren %10 FBS ve 2x antibiyotik içeren yüksek glukozlu DMEM içinde kültürlendi. ). Bu hücre çizgisi, %5 C02'lik nemlendirilmiş bir atmosferde 37 °C'de tutuldu ve ayda bir alt kültürlendi. 2.3. İlaç tedavisi


      [6]-gingerol stoğu (20 mg/ml) etanol içinde hazırlandı ve bu stok dimetil sufoksit (DMSO) içinde seyreltilerek çalışma konsantrasyonları hazırlandı. MTT testi için, insan kolon kanseri hücrelerinin 5×10 3 hücre/kuyu ve 10 4fare IEC'lerinin hücreleri/oyukları 96 oyuklu plakalara ekilmiştir. Hücreler, MTT testi yapılmadan önce 48 saat, 72 saat veya 96 saat süreyle ve Annexin-V boyamasından önce 16 saat süreyle [6]-gingerol ile muamele edildi. PMA (5 mg/ml) DMSO içinde hazırlandı ve -20°C'de saklandı. Tüm kombinasyon tedavilerinde [6]-gingerol, PMA ile tedaviden 2 saat önce eklendi. MAP kinaz inhibitörleri (2.5 mikromolar U0126, 5 mikromolar SP600125, 1'mikromolar SB203580) veya NF-kappaB inhibitörü (18 mikromolar SN50) ile kombinasyon tedavileri için hücre canlılığı tahlilinde/Western blot'ta, hücreler önce inhibitörle 1 saat tedavi edildi ve ardından 2 saat boyunca [6]-gingerol ile ön işleme tabi tutuldu, ardından MTT testi yapılmadan önce 48 saat boyunca PMA'ya maruz bırakıldı. Elektroforetik Mobilite Kaydırma Testi (EMSA) için, 10 6SW-480 hücreleri, 60 mm plakalara ekildi ve hücreler, [6]-gingerol ile 2 saat ve ardından 30 dakika PMA ile ön işleme tabi tutuldu. 2.4. Hücre canlılığı deneyi


      [6]-gingerol'ün sitotoksik etkileri, daha önce [18] açıklandığı gibi MTT testi ile belirlendi ve nispi hücre canlılığı yüzdesi [ A570 of işlenmiş kuyucuklar/ A570 of işlenmemiş kuyucuklar x100] olarak ifade edildi. 2.5. Annexin V-Propidium İyot boyama


      [6]-gingerol ile 16 saatlik muamele ile indüklenen membran flip-flop, üreticinin talimatlarına göre hücrelerin flüoresan izotiyosiyanat-konjuge Annexin V/PI (Santa Cruz Biyoteknoloji) ile boyanmasıyla analiz edildi ve apoptotik hücreler, flüoresan mikroskop altında fotoğraflandı. [19] . Mikroskobik alandaki toplam hücre sayısı, bir faz kontrast mikroskobu altında sayıldı ve aynı alandaki floresan hücrelerin sayısı, bir floresan mikroskobu altında sayıldı. Floresan hücrelerin toplam hücre sayısına oranı, apoptotik hücrelerin yüzdesi olarak temsil edilir. Bu, aynı kuyunun birkaç alanında tekrarlandı ve çizim için ortalaması alındı. 2.6. immünoblotlama


      PMA/[6]-gingerol içeren veya içermeyen tedavileri takiben hücrelerden izole edilen toplam protein, daha önce tarif edildiği gibi Western blotlamaya tabi tutuldu [20] . Kısacası, 60 mikrogram tam hücre lizatı, %10-15 poliakrilamid jel üzerinde ayrıldı, bir PVDF zarı üzerinde lekelendi, karşılık gelen antikorla incelendi ve ECL (Millipore, Billerica, MA, ABD) kullanılarak saptandı. 2.7. Elektroforetik Mobilite Kaydırma Testi (EMSA)


      Daha önce tanımlandığı gibi [21] , PMA ve/veya [6]-gingerol ile tedavi edilen hücrelerde NF-kappa B veya AP-1 transkripsiyon faktörlerinin DNA'ya bağlanma aktivitesini değerlendirmek için EMSA uygulandı . Kısaca, ilaç tedavilerini takiben hücrelerden izole edilen 10 mikrogram nükleer protein, NF kappaB ( 5'TTGTTACAAGGGACTTTCCGCTGGGGACTTTCCAGGGAGGCGTGG-3' ; 37°C'de) için 32 P-ucu etiketli çift sarmallı 45-mer oligonükleotid ile 30 dakika süreyle inkübe edildi. ) veya AP-1 için 21-mer oligonükleotid ( 30°C'de 5′-CGCTTGATGACTCAGCCGGAA-3' ) ve DNA protein kompleksi, kurutulan ve Fosfor Görüntüleyicide (Kişisel) görüntülenen %6,6 denatüre olmayan poliakrilamid jel üzerinde çözüldü. Molecular Imager FX; Bio-Rad Laboratories, Hercules, CA, ABD). 2.8. İstatistiksel analiz


      Tüm deneyler en az üç kopya halinde gerçekleştirildi (n = 3). Hata çubukları, deneylerin ± standart sapmasını (SD) temsil eder. İstatistiksel analiz Student's t-testi kullanılarak yapıldı ve *, ** ve *** sembolleri sırasıyla P değerlerini, p≤0.05, p≤0.005 ve p≤0.001'i temsil ediyor.

      Git: Sonuçlar

      3.1. [6]-gingerol, normal bağırsak epitel hücreleri etkilenmezken, kolon kanseri hücrelerinde doza bağlı sitotoksisiteyi indükler


      [6]-gingerol, SW-480 ve HCT116 hücreleri üzerindeki sitotoksik etkileri için 5 mikromolar ila 300 mikromolar arasında değişen çeşitli konsantrasyonlarda, MTT tahlili kullanılarak 72 saat tarandı. Hücre morfolojisindeki doza bağlı değişiklikler, faz kontrast mikroskobu altında açıkça belirgindi (Şekil 1A). Sonuçlar, [6]-gingerol'ün hem SW-480 hem de HCT116 hücrelerine karşı doza bağlı bir şekilde sitotoksik olduğunu ve daha yüksek konsantrasyonlarda belirgin sitotoksisite ile sırasıyla 205±5 mikromolar ve 283±7 mikromolar IC50 değeri ürettiğini göstermektedir (Şekil 1BveŞekil 1C). Etki, SW-480 durumunda HCT116'dan daha belirgindi ve bu nedenle önceki tüm çalışmalarda kullanıldı. Aksine, fare normal IEC'leri ile MTT testinin sonuçları, SW-480'e karşı [6]-gingerolün IC50 konsantrasyonunun iki katında bile yalnızca %10-15 sitotoksisite gösterdi. 500 mikromolar [6]-gingerol (Şekil 2A). Etkili konsantrasyonlarda [6]-gingerol'ün zamana bağlı etkisinin incelenmesi, fare normal IEC'lerinin hücre canlılığı değişmeden kalmasına rağmen, SW-480 hücrelerinin sitotoksisitesinde 48 saatten 96 saate kadar bir artış ortaya çıkardı (Şekil 2B).Bu sonuçlar, [6]-gingerol'ün, daha yüksek konsantrasyonlarda bile normal hücreler için toksik olmadan kanserli hücrelerde sitotoksisiteyi indüklemedeki özgüllüğünü göstermektedir.
      İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı pone.0104401.g001.jpg'dir.
      Şekil 1
      [6]-gingerolün SW-480 kolon kanseri hücreleri üzerindeki sitotoksik etkileri.
      (A) 72 saat boyunca belirtilen konsantrasyonlarda [6]-gingerol ile tedavi edildiğinde SW-480 hücrelerindeki morfolojik değişikliklerin faz kontrast mikroskobu görüntüleri. (B) [6]-gingerol işleminden sonra SW-480 hücrelerinin göreli hücre canlılığı, MTT tahlili ile belirlenir ve işlenmemiş kontrolün yüzdesi olarak ifade edilir. 5000 hücre/oyuk SW-480 hücreleri, MTT tahlilinden önce 72 saat boyunca belirtilen [6]-gingerol konsantrasyonuyla işlendi.(C) [6]-gingerol işleminden sonra HCT-116 hücrelerinin nispi hücre canlılığı. Sonuçlar, üçlü deneylerin ortalaması ± standart sapma (SD) olarak temsil edilir.

      İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı pone.0104401.g002.jpg'dir.
      Şekil 2.Karşılaştırma
      [6]-gingerolün SW-480 kolon kanseri hücreleri üzerindeki sitotoksik etkilerinin fare normal bağırsak epitel hücreleri (IEC'ler) ile karşılaştırılması.
      (A) 72 saat boyunca belirtilen konsantrasyonlarda [6]-gingerol ile tedavi edilen IEC'lerin faz kontrast mikroskobu görüntüleri. (B) [6]-gingerolün SW-480 ve IEC'ler üzerinde 48, 72 ve 96 saatte zamana bağlı sitotoksik etkileri. 5000 hücre/oyuk SW-480 ve 10.000 hücre/oyuk IEC'ler, MTT tahlilinden önce belirtilen [6]-gingerol dozlarıyla 48 ila 96 saat süreyle işlendi. Sonuçlar, üçlü deneylerden elde edilen ortalama ± SD olarak temsil edilir. 3.2. [6]-gingerol, kolon kanseri hücrelerinde apoptozu indükler, ancak normal bağırsak epitel hücrelerinde değil


      [6]-gingerol tarafından sitotoksisitenin indüklenmesine apoptozun aracılık edip etmediğini değerlendirmek için, Annexin-V/PI boyaması gerçekleştirilerek [6]-gingerol ile muamele edilmiş SW-480 hücrelerinde membran flip-flop'u ve fosfotedilserinin dışsallaştırılması izlendi. . Annexin-V/PI boyamasından elde edilen sonuçlar, flüoresan hücrelerde doza bağlı artıştan da anlaşılacağı gibi, [6]-gingerol ile muamele edilmiş SW-480 hücrelerinde erken apoptotis olaylarını doğruladı (Şekil 3A). Fare IEC'leri üzerinde gerçekleştirilen benzer çalışmanın sonuçları, 500 mikromolar [6]-gingerol tedavisinde bile yalnızca ihmal edilebilir sayıda floresan hücre gösterdi.100 mikromolar 5-Fluro Uracil (5-FU), Annexin V boyaması için pozitif kontrol görevi gördü normal IEC'lerde (Şekil 3B).
      İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı pone.0104401.g003.jpg'dir.
      Figür 3
      [6]-gingerol'ün SW-480 hücrelerinde ve IEC'lerde apoptozun indüklenmesi üzerindeki etkileri.
      (A, üst panel) SW-480 hücreleri, belirtilen konsantrasyonlarda [6]-gingerol ile 16 saat süreyle işlendi ve Annexin V/propidyum iyodür (PI) pozitifliği için boyandı. Yeşil floresan erken apoptoz sırasında hasarlı hücre zarına Annexin V bağlanmasını gösterir ve kırmızı floresan geç apoptoz sırasında maruz kalan DNA'ya PI bağlanmasını gösterir. (A, alt panel) Annexin V/PI pozitif SW-480 hücrelerinin yüzdesinin [6]-gingerol konsantrasyonuna göre grafik gösterimi. (B, üst panel) IEC'ler, Annexin V-PI boyaması yapılmadan önce 16 saat boyunca 500 uM'ye kadar [6]-gingerol ile işlendi. 100 uM 5-FU ile tedavi, apoptoz indüksiyonu için pozitif kontrol olarak kullanıldı. (B, alt panel) [6]-gingerol/5-FU tedavisinin ardından Annexin/PI pozitif IEC yüzdesinin temsili histogramı.

      Kaspazlar-8, 9, 3, 7'nin aktivasyonu ve PARP'nin bölünmesi için [6]-gingerol ile işlenmiş SW-480 hücrelerinin hücre özlerini immünoblotlama deneyleri kullanarak analiz ettik. Kaspazlar, apoptotik program sırasında aktive olan bir sistein proteaz ailesidir. Pro-caspase 8'in aktif fragmanlarına (p43/41) ve procaspase-9'un aktif fragmanlarına (p35/37) önemli ölçüde ayrıldığını gözlemledik (Şekil 4A ve 4B). Efektör kaspazlar 3 ve 7'nin aktivasyonu, procaspase-3'ü aktif fragmanlarına bölen (p17/19) ve procaspase-7'nin aktif fragmanına bölünmesini arttıran [6]-gingerol tarafından doza bağlı bir şekilde indüklendi. (s20) (Şekil 4C ve 4D). Son olarak, kaspaz-3'ün bir substratı olan DNA tamir proteini PARP'ın bölünmesini inceledik. Hücreleri 200 ve 300 mikromolar [6]-gingerol ile işledikten sonra, PARP'ın 116-kDa formu 89'a bölündü. kDa parçası (Şekil 4E), kaspaz aracılı bir apoptozu doğrular. 200 mikromolar [6]-gingerol, PARP bölünmesine ve apoptoza yol açan kaspazları etkin bir şekilde aktive ettiğinden, bu konsantrasyon daha sonraki sinyalleme çalışmalarında kullanıldı.
      Resim, çizim vb. tutan harici bir dosya. Nesne adı pone.0104401.g004.jpg'dir.
      Şekil 4
      [6]-gingerol'ün SW-480 hücrelerinde kaspazların aktivasyonu ve PARP bölünmesi üzerindeki etkileri.
      SW-480 hücreleri (106 hücre /kuyu), 48 saat boyunca belirtilen [6]-gingerol konsantrasyonları ile işlendi ve tüm hücre özütleri, PVDF zarı üzerinde Western blotlandı. Kaspazların aktivasyonu ve PARP klevajı, lekelenmiş zarın Kaspaz-3, 7, 8, 9 ve PARP'a karşı antikorlarla araştırılmasıyla saptandı. Lekeler, Gelişmiş Kemilüminesans (ECL) kullanılarak geliştirildi. Kontrol işlemleriyle bantların nispi kat farkları, Biorad-Quantity One yazılımı kullanılarak bantların hacim analizinden belirlendi. β-aktin, her durumda yükleme kontrolü olarak görev yaptı. 3.3. [6]-gingerol, SW-480 hücrelerinde MAP kinazlarının PMA kaynaklı aktivasyonunu inhibe eder


      PMA, mitojenle aktive olan protein (MAP) kinaz yolunun önde gelen yukarı akış düzenleyicileri olan hemen hemen tüm protein kinaz C (PKC) izozimlerini aktive eden iyi bilinen bir tümör promotörüdür [22] , [23] . Ras/ Farklı sürelerde 50 ng/ml (80 nM) PMA ile tedaviye yanıt olarak SW-480 hücrelerinde Raf/hücre dışı sinyalle düzenlenen kinaz (ERK1/2), c-jun NH2 -terminal kinaz (JNK) ve p38 MAP kinaz aralıklarla incelenmiştir. Western blot analizi, ERK1/2, JNK ve p38'in zamana bağlı bir fosforilasyonunu ortaya çıkardı. Her üç durumda da fosforilasyon, PMA işleminden 5 dakika sonra belirgindi ve 30 dakikada zirveye ulaştı ve ardından 120 dakika geriledi (Şekil 5A). [6]-gingerol'ün MAP kinazlarının PMA kaynaklı geçici fosforilasyonu üzerindeki etkisi, 2 saat boyunca 200 mikromolar [6]-gingerol ile ön işleme tabi tutulmuş, 30 dakikalık PMA ile işlenmiş SW-480 hücreleri üzerinde incelenmiştir. İlginç bir şekilde, [6] - gingerol ön işlemi, ERK1/2 ve JNK'nın PMA ile indüklenen geçici fosforilasyonunu neredeyse tamamen ortadan kaldırdı, ancak SW-480 hücrelerinde p38 MAP kinazın fosforilasyonunu yalnızca kısmen ortadan kaldırdı (Şekil 5B).
      Resim, çizim vb. içeren harici bir dosya. Nesne adı pone.0104401.g005.jpg'dir.
      Şekil 5
      SW-480 hücrelerinde [6]-gingerol'ün MAP kinazlarının PMA kaynaklı fosforilasyonu ve AP-1 ve NF-kappaB aktivasyonu üzerindeki etkisi.
      (A) Gece boyunca büyütülen SW-480 hücreleri, farklı zaman aralıklarında (0-120 dakika) 50 ng/ml PMA ile muamele edildi ve tüm hücre lizatı, fosfo-ERK1/2'ye karşı antikorlar kullanılarak problanan PVDF zarı üzerinde immünoblotlandı, fosfo ECL tarafından geliştirilen -JNK ve fosfo-p38. Bu MAP kinazlarının PMA kaynaklı fosforilasyonunun kinetiği bu lekeden takip edildi (B) SW-480 hücreleri, 30 dakika boyunca 50 ng/ml PMA ile işleme tabi tutulmadan önce 200 uM [6]-gingerol ile ön işleme tabi tutuldu ve tamamı hücre lizatları, immünoblotlandı, incelendi ve yukarıdaki gibi tespit edildi. Kontrol işlemlerine sahip bantların nispi kat farkı, her şeridin altında belirtilmiştir. β-aktin, her durumda yükleme kontrolü olarak görev yaptı. (C) Belirtilen konsantrasyonlarda [6]-gingerol ile 2 saat ön işleme tabi tutulan SW-480 hücreleri, 30 dakika PMA (50 ng/ml) ile işlendi. Her muameleden elde edilen nükleer ekstraktlar, AP-1 veya (D) NF-kappaB'nin aktivasyonu için izotop etiketli AP-1/NF-kappaB'ye özgü DNA bağlanma probu üzerinde transkripsiyonel bağlanma tahlili gerçekleştirilerek ve elektroforetik hareketlilik kaymasında analiz edilerek analiz edildi. testi (EMSA). Her durumda ok başı, AP-1/NF-kappaB ve DNA probu arasındaki kompleksleri gösterir. 3.4. [6]-gingerol, SW-480'de PMA kaynaklı AP-1'in transkripsiyonel bağlanma aktivitesini inhibe eder, ancak NF-kappaB'yi inhibe etmez


      PMA, farklı kanser hücrelerinde transkripsiyon faktörleri AP-1 ve NF-kappaB'nin iyi bilinen bir aktivatörüdür [24] , [25] , [26] , [27] . AP-1'in SW-480'de PMA'ya yanıt olarak indüklenen transkripsiyonel bağlanma aktivitesini belirlemek için, EMSA için 50 ng/mikrolitre PMA ile 1 saat tedavi edilen hücrelerden alınan nükleer ekstrakt kullanıldı. PMA tedavisi üzerine SW-480 hücrelerinde AP-1'in net bir doza bağlı aktivasyonu gözlendi (Şekil 5C; Şerit 5). [6]-gingerol (Şekil 5C; Şerit 6–8). [6]-gingerol ön tedavisi, 300 mikromolar [6]-gingerol'de DNA bağlanmasında önemli bir inhibisyon olmasına rağmen, NF-kappaB'nin transkripsiyonel bağlanma özelliği üzerinde şiddetli bir etki göstermedi (Şekil 5D; Şerit 6–8). 3.5. [6]-gingerol, ERK1/2 ve JNK MAP kinaz yollarının inhibisyonu yoluyla SW-480'de PMA kaynaklı hücre proliferasyonunu inhibe eder


      [6]-gingerol'ün SW-480'de PMA ile aktive olan sinyal yolları üzerindeki inhibitör etkilerinin ardındaki mekanik ayrıntıları daha iyi anlamak için, SW-480 hücrelerinin canlılığı ve proliferasyonu, çeşitli kombinasyonlarla tedavi edildikten sonra MTT tahlili ile izlendi. PMA, [6]-gingerol ve MAP kinaz veya NF-kappaB inhibitörleri. Öncelikle, PMA tedavisi SW-480 hücrelerinin çoğalmasını önemli ölçüde arttırdı. Ancak, hücrelerin [6]-gingerol ön işlemi, PMA kaynaklı proliferasyonu büyük ölçüde azalttı. Bununla birlikte, [6]-gingerol tedavisinden sonra SW-480 hücrelerinin canlılığı, PMA varlığında nispeten daha yüksekti (Şekil 6A).
      Resim, çizim vb. tutan harici bir dosya. Nesne adı pone.0104401.g006.jpg'dir.
      Şekil 6
      [6]-gingerol'ün, MAP kinazları ve NF-kappaB inhibitörlerinin varlığında SW-480'de PMA ile indüklenen hücre proliferasyonu üzerindeki etkileri.
      (A) Bir gecede büyüyen SW-480 hücreleri, inhibitörlerle (ERK1/2 için U0126, SP600125, SB203580, sırasıyla JNK ve p38 MAP kinazlar veya NF-kappaB için SN50) 1 saat ön işleme tabi tutuldu ve ardından [6] ile işlendi. 2 saat boyunca -gingerol, ardından MTT kullanarak hücre canlılığı testi gerçekleştirmeden önce 48 saat boyunca PMA'ya maruz bırakma. Her tedavide SW-480 hücrelerinin nispi canlılığı, işlenmemiş kontrolün yüzdesi olarak temsil edildi. Sunulan değerler, üçlü deneylerin ortalaması ± SD'dir. [6]-gingerol ile (B) U0126 ve (C) SP600125 inhibitörlerinin kombinasyonu ile tedavi edilen hücrelerden ve uygun kontrol tedavilerinden elde edilen toplam lizatlar, Western lekelendi ve anti-kaspaz-3 antikoru ile incelendi ve lekeler, ECL kullanılarak geliştirildi. Beta-aktin, yükleme kontrolü olarak görev yaptı.

      Daha sonra, aynı deneyleri MAP kinaz ailesi üyelerinin inhibitörleri ve NF-kappaB ile ön işleme tabi tutulmuş SW-480 hücreleri üzerinde gerçekleştirdik. U0126, ERK1/2 yolunun spesifik bir inhibitörü olarak, SP600125, JNK aktivasyonunun bir inhibitörü olarak ve SB203580, p38 MAP kinaz yolunun inhibitörü olarak kullanıldı. SN50, NF-kappaB transkripsiyon faktörünün bir inhibitörü olarak kullanıldı. Yukarıdaki inhibitörlerin hiçbiri, test edilen konsantrasyonda SW-480 hücreleri üzerinde herhangi bir sitotoksik etkiye sahip değildi (Şekil 6A). Ancak, U0126 ve SP600125 ile ön tedavi, SW-480 hücrelerinin PMA kaynaklı proliferasyonunu, [6]-gingerol ön-muamelesine kıyasla daha az bir ölçüde olsa da, önemli ölçüde azalttı (Şekil 6A). Bu sonuçlar, ERK1/2 ve JNK MAP kinaz yollarının, PMA varlığında SW-480 hücrelerinin proliferasyonunu indüklemedeki temel rolünü kanıtlamaktadır. SB203580 ve SN50 ile ön muamelenin, SW-480 hücrelerinin PMA kaynaklı proliferasyonu üzerinde çok az etkisi oldu (Şekil 6A), p38 MAP kinaz yolunun ve NF-kappaB transkripsiyon faktörünün bu süreçte yer almadığını kanıtlıyor.

      Son olarak, [6]-gingerol tedavisi, PMA ile indüksiyondan önce yukarıdaki inhibitörlerin her biri ile ön işleme tabi tutulmuş SW-480 hücreleri üzerinde gerçekleştirildi. Şaşırtıcı bir şekilde, her durumda hücre canlılığı, PMA tedavisinden önce sadece [6]-gingerol ile yapılan ön tedaviye benzer bir seviyeye düşürüldü. Bu sonuç, U0126'nın varlığında [6]-gingerol'ün, JNK MAP kinazın aktivasyonunu ortadan kaldırarak bu ERK1/2 inhibitörünü tamamladığını ve SP600125'in varlığında ERK1/2 aktivasyonunu inhibe ettiğini ve böylece hücre canlılığını aynı seviyeye düşürdüğünü göstermektedir. her iki durumda da seviye. SB203580 ve SN50 inhibitörleri [6] varlığında -gingerol, hem ERK1/2 hem de JNK MAP kinaz yolakları üzerinde inhibitör etki gösterir, böylece hücre canlılığını yukarıdaki ile aynı seviyeye düşürür. Bu sonuçlar, hem ERK1/2 hem de JNK MAP kinaz yollarının, SW-480'in PMA kaynaklı hücre proliferasyonunun [6]-gingerol aracılı inhibisyonunda eşit katkısını kanıtlamaktadır. Tek başına [6]-gingerol ile ön işleme kıyasla [6]-gingerol ile U0126 veya SP600125 kombinasyonu ile ön işlemden kaynaklanan PMA ile işlenmiş SW-480 hücrelerinin proliferasyonu üzerinde hiçbir aditif veya sinerjistik inhibitör etki olmadığından , ERK1/2 ve JNK MAP kinaz yolu, SW-480'de PMA kaynaklı hücre proliferasyonunun inhibisyonu sırasında [6]-gingerol tarafından etkilenen anahtar sinyal yolları gibi görünmektedir.

      SW-480 hücrelerinin [6]-gingerol ve U0126 veya SP600125 tarafından PMA ile indüklenen hücre proliferasyonu üzerindeki inhibe edici etkilerin apoptoz aracılı olup olmadığını test etmek için, bu tedavilerin her birinden kaspaz 3'ün aktivasyonunu Western lekeleme ile izledik. [6]-gingerol, U0126 veya SP600125 içeren tüm tedavilerde ve [6]-gingerol ve bu inhibitörlerin kombinasyonunda procaspase 3'ün bölünmesini gözlemledik (Şekil 6B ve 6C). İnhibitörler ve zencefilol birlikte kullanıldığında kaspaz 3 ana bandında ek bir bozunmanın üretilmediğini not etmek de ilginçti. Bu, PMA tarafından indüklenen ERK1/2/JNK/AP-1 yolunun aşağı regülasyonunun, [6]-gingerolün SW-480'de PMA ile indüklenen hücre proliferasyonu üzerindeki inhibitör etkilerinden sorumlu olduğunu kanıtlar.

      Git: Tartışma


      [6]-gingerol'ün anti-kanser ve antiinflamatuar özellikleri uzun zamandan beri bilinmektedir ve birçok çalışma bu özelliklerin arkasında farklı moleküler mekanizmalar olduğunu bildirmiştir. [6]-gingerol'ün çeşitli orijinli kanserlere karşı inhibe edici etkileri daha önce rapor edilmişti. [6]-gingerol'ün özellikle deri karsinoma karşı etkili olduğu ve endotelyal hücrelerde anjiyojenezi inhibe ettiği gösterilmiştir [28] , [29]. Zencefil, bir besin takviyesi ve birçok geleneksel ilacın önemli bir bileşeni olduğundan, [6]-gingerol'ün kolon kanseri gibi mide-bağırsak sistemi kanseri üzerindeki etkilerini incelemek mantıklıdır. Ayrıca, insanlarda oral olarak uygulanan zencefil özlerinden elde edilen zencefilin aktif bileşenleri üzerindeki farmakokinetik çalışmalar, plazma ve kolon dokularında serbest veya konjuge formda önemli düzeyde [6]-gingerol saptadı [30] , [31] .. Sıçanlarda [6]-gingerol'ün biyoyararlanımı üzerine başka bir çalışma, oral olarak uygulandığında, uygulamadan on dakika sonra plazmada 4.3 ug/ml'lik konsantrasyonlarda tespit edildiğini öne sürdü. Aynı çalışma, dokularda yüksek dağılımını ve en yüksek konsantrasyonunun gastrointestinal sistem dokularında olduğunu da belirlemiştir. [6]-gingerol'ün doku/plazma oranının >1 olduğu bildirildi ve lipofilikliğine bağlandı [32] . Tüm bu gerçekler, [6]-gingerol'ün kolon kanseri üzerindeki kanser önleyici etkileri üzerine yapılan bir çalışmayı desteklemektedir.

      21. yüzyılın ilk on yılında , fitokimyasalların kanser önleyici etkilerinin ardındaki mekanizmaların karakterize edilmesine yönelik artan sayıda çalışma yapılmıştır. Farklı kanser türlerine karşı [6]-gingerol'ün anti-kanser özelliklerinin mekanik değerlendirmesi üzerine yapılan çalışmalar, kanser hücrelerinde sitotoksik veya pro-apoptotik etkilere neden olan çoklu etki mekanizmalarına ilişkin değerli bilgiler sağlamıştır. [6]-gingerol'ün kolon kanserine karşı anti-kanser aktivitelerine ilişkin bazı yeni raporlar, farklı kolon kanseri hücre hatları üzerindeki etkisi için farklı mekanizmalar sunmuştur [13] , [14] , [15] , [33] . SW-480 hücre hattı üzerindeki bu çalışma, in vitro205 mikromolarlık bir IC50 değeri ile [6]-gingerolün sitotoksisitesi . [6]-gingerol'ün SW-480 hücre hattı üzerindeki in vitro sitotoksik etkileri üzerine önceki çalışma , bu konsantrasyonda yalnızca %17 hücre ölümü bildirdi [13] . Etkilerin büyüklüğündeki bu farklılıklar, kullanılan yöntemdeki farklılıklardan kaynaklanıyor olabilir. Sitotoksisiteyi incelerken. Aynı çalışmanın, 72 saat boyunca 200 mikromolar [6]-gingerol ile tedavi edildiğinde LoVo hücrelerinde yalnızca %13 sitotoksisite bildirmesi de dikkate değerdir, bu daha sonra farklı bir çalışmada aynı hücre hattında 50 mikromolarda %75 olarak rapor edilmiştir. 48 saatlik tedaviden sonra [15]. [6]-gingerol ile muameleden sonra SW-480 hücrelerinde apoptotik hücrelerde (Annexin-V/PI pozitif hücreler), 300 uM konsantrasyonda 25 kata kadar doza bağlı artış, sitotoksisitenin esas olarak apoptoz tarafından indüklendiğini kanıtladı. Önceki çalışmalar [6]-gingerol [13] , [34] 'ün etki mekanizması olarak hem hücre siklusu durması hem de apoptozu bildirmiştir . [13] tarafından SW-480'de benzer koşullarda apoptozda iki kat artış rapor edildi , ancak [6]-gingerol tedavisine yanıt olarak hücre döngüsünde önemli G2/M tutuklaması gösterdiler. Önceki birçok rapor, [6]-gingerol'ün kanser hücrelerinde yalnızca 300 mikromolarda veya yakınında apoptozu indüklediğini ileri sürmüştür [13] , [34] , [35] , [36]ve bu konsantrasyonun altında, esas olarak diğer mekanizmalarla sitotoksisiteye neden olur. Bununla birlikte, 100 mikromolar [6]-gingerol ile bile işlenmiş SW-480'de flüoresan hücreler gözlemledik, bu da daha düşük konsantrasyonlarda bile erken apoptoz olaylarını açıkça ortaya koyuyor. Ayrıca, çalışmamızda kaspazlar-8,9, 3 ve 7'nin doza bağlı aktivasyonu, [6]-gingerol ile tedavi edilen SW-480 hücrelerinde hücre ölümünün ana mekanizması olarak apoptozu daha da doğruladı. Kaspaz-9'un [6]-gingerol tarafından aktivasyonu, [6]-gingerol aracılı apoptotiste mitokondriyal yolun dahil olduğunu doğrular. Bununla birlikte, [6]-gingerol tarafından indüklenen kaspaz-8'in bölünmesi, esasen reseptör aracılı yolun tutulumunu önermeyebilir, çünkü mitokondriyal yol aynı zamanda BH3 etkileşimli alan ölüm agonistinin (BID) bölünmesi yoluyla kaspaz-8'in bölünmesine yol açabilir. ) [37]. Bir p53-mutant kolon kanseri hücre dizisi olan SW-480'de [6]-gingerol tarafından apoptozun indüklenmesi, p53-mutant hücrelerin standart kemoterapötiklere ve radyasyona daha dirençli olduğu düşünüldüğünden özellikle ilgi çekicidir [13] , [36] . [6]-gingerol tarafından p53'ten bağımsız apoptoz indüksiyonu, daha önce pankreas kanseri hücre hatlarında rapor edilmişti; burada Sikline bağımlı kinaz inhibitörü p21 cip1'in ifadesi, p53 ifadesinden bağımsız olarak artarak Siklin A ve Sikline bağımlı azalmaya yol açmıştır. kinaz ekspresyonu ve hücre döngüsünün durdurulması [36] .

      [6]-gingerol'ün genellikle normal hücreler için toksik olmadığı kabul edilse de, son çalışmaların bazıları aksini bildirdi. [6]-gingerolün daha yüksek dozlarda genotoksik etkileri, insan hepatom G2 hücrelerinde gösterilmiştir [38] . Başka bir yakın tarihli çalışma, [6]-gingerol tedavisinin, insan saç foliküllerinin dermal papilla hücrelerinin proliferasyonunun ve saç şaftının uzamasının önemli ölçüde doza bağımlı inhibisyonuna yol açtığını bildirdi [39].50 mikromolar [6]-gingerol'ün altında dermal papilla hücrelerinde apoptozu göstermede başarılı oldular. Bu çalışmaların ışığında, [6]-gingerol'ün kültürlenmiş fare bağırsak epitel hücreleri üzerindeki sitotoksik etkilerini inceledik. Sonuçlarımızdan görüldüğü gibi, [6]-gingerol 500 mikromolarda bile önemli bir sitotoksisiteye neden olmadı. Bu konsantrasyonlarda apoptoz indüksiyonunun olmaması, [6]-gingerol'ün mide-bağırsak yolunun normal hücreleri için toksik olmadığını kanıtladı. Sonuçlarımız, 900 mikromolar [6]-gingerolün sıçan bağırsak epitel hücrelerinde yalnızca %50 büyüme inhibisyonu oluşturduğunu [36] bildiren önceki bir raporla uyumludur..Dolayısıyla [6]-gingerol, farklı kökenlerden gelen normal hücrelerin çoğalması üzerinde farklı etkiler gösteriyor olabilir, ancak mide-bağırsak bozukluklarının tedavisinde kullanım için kesinlikle güvenli görünüyor.

      Protein kinaz C (PKC), MAP kinaz ailesinin üyeleri de dahil olmak üzere substratlarını fosforile etme ve aktive etme yetenekleri aracılığıyla hücre büyümesini, farklılaşmasını ve apoptozu düzenlediği bilinen kinazlar grubudur [40] , [41] . Forbol-12-miristat-13-asetat (PMA) gibi forbol esterler, diasilgliserol ve fosfatidilserin gibi fizyolojik aktivatörlerinin ikameleri olarak PKC'yi aktive etmedeki rolleri nedeniyle bilinen tümör promotörleridir [22] , [42] . MAP kinaz yolakları, kolon kanseri hücrelerinde proliferasyon, invazyon ve metastazın düzenlenmesinde yer alır [43] , [44]. Sonuçlarda sunulduğu gibi, SW-480 hücrelerinde PMA tedavisi, Western lekelemede fosforile formlarındaki geçici artıştan da anlaşılacağı gibi, ERK1/2, JNK ve p38 MAPK gibi MAP kinaz ailesinin üyelerini aktive etti. [6]-gingerol ile ön tedavi üzerine bu aktivasyonun dikkate değer şekilde bastırılması, ERK1/2 ve JNK MAP kinazlarda çok belirgindi, ancak p38 MAPK durumunda daha azdı. Western lekelemeden elde edilen sonuçlar, MAP kinaz inhibitörlerinin mevcudiyetinde hücre proliferasyon deneyinden de doğrulandı. U0126 ve SP600125'in varlığında SW-480 hücrelerinin PMA kaynaklı proliferasyonunun tersine çevrilmesi, ERK1/2 ve JNK'nın hücre proliferasyonundaki rolüne dair kanıt sağlar. Ayrıca p38 MAP kinaz inhibitörü SB203580'in etkisinin olmaması, süreçte p38 MAP kinazın rolünü dışlar. [6]-gingerol ve ERK1/2 veya JNK inhibitörleri ile kombinasyon tedavisi, bu MAP kinaz yollarının her birinin PMA ile indüklenen aktivasyonunun, [6]-gingerol ve bunların aditif etkileri tarafından birbirinden bağımsız olarak aşağı regüle edildiğini gösterir. aşağı regülasyon, [6]-gingerol ile görülen inhibitör etkilerle sonuçlanır. SW-480 hücrelerinde hem ERK1/2 hem de JNK yolaklarının inhibisyonunu birlikte gerçekleştirmemiş olmamıza rağmen, bir çift inhibisyonun, tipik olarak tek başına [6]-gingerol ile olduğu gibi PMA kaynaklı hücre proliferasyonunun inhibisyonuyla sonuçlanacağını tahmin ediyoruz. ERK1/2 veya JNK inhibitörleri ile kombinasyon halinde [6]-gingerol'ün ek inhibitör etkisi görülmediğinden, SW-480 hücrelerinde PMA tarafından yukarı regüle edilen başka hiçbir ek faktörün [6]-gingerol tarafından etkilenmediğine inanıyoruz. .[45] , [46] . MAP kinaz yolunun bileşenlerinin inhibisyonu, uzun süredir kolon kanserinin ilerlemesini durdurmak için ideal bir yaklaşım olarak kabul edilmiştir [46] . Epikateşin gallat, kurkumin, silibinin ve kırmızı ginseng gibi diğer doğal bileşiklerin kolon kanseri hücrelerinde apoptozu indüklediğine dair raporlar vardır. MAP kinazların inhibisyonu yoluyla [15] , [47] , [48] , [49] . [6]-gingerol'ün daha önce fare cilt kanseri hücre hatları, hepatokarsinom hücreleri ve pankreas kanseri hücrelerinde ERK1/2, JNK ve p38 MAP kinazlarının fosforilasyonunu inhibe ettiği gösterilmiştir [28] , [34] , [36] , [50]. Ancak, bildiğimiz kadarıyla mevcut çalışma, kolon kanseri hücrelerinde PMA'nın neden olduğu proliferasyonu tersine çevirmede [6]-gingerol'ün etki mekanizması olarak ERK1/2 ve JNK MAP kinazlarının inhibisyonunu ilk kez bildirmektedir.

      NF-kappB ve AP-1 gibi transkripsiyon faktörlerinin, kolon epitel kanserinin tümörijenezi, progresyonu, invazyonu ve metastazındaki rolünü ortaya koyan artan kanıtlar vardır [46] . Kolon kanserinde NF-kappaB, ROS yollarını inhibe ederek, JNK kaskadını inhibe ederek ve anti-apoptotik genler Bcl-2, Bcl-x ve cIAP'lerin ekspresyonunu indükleyerek [51] gibi birçok yolla anti-apoptoz rolü oynar. , [52] . NF-kappaB'nin ayrıca vasküler endotelyal büyüme faktörü (VEGF), siklooksijenaz 2 (COX-2), interlökin (IL)-6 ve matris metaloproteinazları (MMP'ler) yukarı doğru düzenleyerek kolon kanseri tümör hücrelerinde anjiyogenezi, invazyonu ve metastazı kolaylaştırdığı bilinmektedir. [52] , [53]. AP-1 grubu transkripsiyon faktörleri, kolon kanserinin tümörogenezinde daha doğrudan bir role sahiptir. AP-1'in gelişmiş aktivitesi, insan kolon adenokarsinomunda gösterilmiştir ve kolon adenokarsinomunun çoğunluğunun immün-histokimyasal analizi, AP-1'in EGFR ve COX-2 gibi aşağı akış hedeflerinin yüksek ekspresyonu ile ilişkili yüksek seviyeli ekspresyonunu ortaya çıkarmıştır [ 46] . AP-1 aynı zamanda katı tümörlerde karşılaşılan ve onların kemoterapi ve radyoterapiye direncine katkıda bulunan hipoksik koşullara karşı anti-apoptotik cevaba aracılık eder [54] . AP-1, AP-1 proteininin Jun ve Fos bileşenlerini fosforile eden ve hedef bağlanmalarını kolaylaştıran MAP kinazların doğrudan düzenleyici kontrolü altındadır [46] , [54].Yüksek konsantrasyonlarda safra asitlerinin varlığı ayrıca kolon hücrelerinde PKC ve ERK1/2 sinyali yoluyla AP-1 ekspresyonunu indükleyerek tümörün ilerlemesine neden olur [55] . PMA ile tedavi hem NF-kappaB'yi hem de AP-1 transkripsiyon faktörlerini Ras/Raf/ERK1/2, JNK ve fosfoinositise-3-kinaz/Akt sinyal yolakları [56] , [57]. Bizim çalışmamızda da PMA tedavisi, transkripsiyonel bağlanmalarındaki artıştan da anlaşılacağı gibi, SW-480 hücrelerinde hem NF-kappaB'yi hem de AP-1'i yukarı regüle etti. [6]-gingerol ile ön tedavi, yukarı regüle edilmiş AP-1'i büyük ölçüde azalttı ve 300 uM konsantrasyonda transkripsiyonel bağlanmalarını neredeyse tamamen ortadan kaldırdı. Aksine [6]-gingerol, NF-kappaB'nin transkripsiyonel bağlanması üzerinde çok az bir etkiye sahipti. NF-kappa B'nin SN50 ile inhibisyonunun, SW-480'in PMA ile indüklenen hücre proliferasyonu üzerinde herhangi bir önemli etkisi olmadı; bu, PMA ile indüklenen NF-kappaB'nin SW-480 hücrelerinin proliferasyonunu artırmada doğrudan bir rolü olmadığını düşündürür. Bu, [6]-ginerol'ün SW-480 hücrelerinde sitotoksisiteye yol açarken PMA ile indüklenen NF-kappaB üzerinde çok az etkiye sahip olduğu gerçeğiyle birlikte gider. Kafeik asit 3'ün inhibitör özellikleri için daha önce benzer etkiler rapor edilmişti,[57] . CADPE'nin, JNK ve p38 MAP kinazları üzerinde çok az etkiyle, AP-1'in transkripsiyonel bağlanmasını inhibe ederek, ancak NF-kappaB'nin DNA bağlanması üzerinde hiçbir etkisi olmadan, ERK1/2'nin fosforilasyonunu inhibe ettiği bildirildi. SW-480'in PMA ile indüklenen hücre proliferasyonunun inhibisyonunu incelemeye AP-1'in herhangi bir inhibitörünü dahil etmemiş olsak da, sonuçlarımız AP-1'in inhibisyon yoluyla [6]-gingerol tarafından aşağı regüle edildiğini göstermektedir. SW80 hücrelerinde ERK1/2 ve JNK MAP kinazın fosforilasyonu. ERK1/2 yolunun c-Fos bileşeninin aktivasyonunda yer aldığı ve JNK yolunun AP-1'in hem c-Jun hem de c-Fos bileşenlerinin aktivasyonunda yer aldığı iyi bilinmektedir [54] .. Ayrıca kaspaz-3'ün ERK1/2, JNK MAP kinazın inhibisyonu ve [6]-gingerol ile aktive olduğunu ve SW-480 hücrelerinin PMA kaynaklı proliferasyonunun inhibisyonunu sağladığını gördük. Bu nedenle, [6]-gingerol, SW-480 hücrelerinde PMA tarafından aktive edilen Ras/Raf/ERK1/2/JNK/AP-1 yolunun aktivasyonunu inhibe ederek etkisini gösteriyor olmalıdır. MAP kinazlarını, AP-1 dimerizasyonunu veya AP-1 transkripsiyonel bağlanmasını inhibe eden bileşikler ve küçük moleküller, kolon kanseri tedavisi için ideal adaylar olarak kabul edilir [46] . Böylece [6]-gingerol, kolon kanserine karşı bir anti-kanser ajanı olarak geliştirilmek için ideal bir aday olabilir.

      [6]-gingerol'ün kolon kanseri hücreleri üzerindeki etkisine ilişkin önceki çalışmalar, bu çalışmadan farklı moleküler mekanizmaları tanımlamaktadır. Lee ve diğerleri, 2008 [13] , [6]-gingerol'ün proapoptotik etkisi ve hücre döngüsü durmasının ardındaki mekanizma olarak Cyclin D1'in inhibisyonunu ve NAG-1'in aktivasyonunu ortaya çıkardı. Jeong ve diğerleri tarafından yapılan başka bir ilginç çalışma, 2009 [14], Lökoterien B4 sentezindeki terminal enzim olan Lökotrien A4 hidrolazın, kültürde ve ksenogreft modelinde HCT116 kolon kanseri hücrelerinin ankraj bağımlı büyümesinin inhibe edilmesinde [6]-gingerolün etki alanı olarak inhibisyonunu göstermiştir. LoVo hücreleri üzerindeki [6]-gingerol üzerindeki inhibitör etki üzerine yapılan bir başka yakın tarihli çalışma, hücre döngüsü düzenleyicileri Cyclin A, B1 ve CDK1'in aşağı regülasyonunu ve ayrıca etki mekanizması olarak hücre içi reaktif oksijen türlerinin (ROS) oluşumundaki artışı açıklamaktadır . 15] .Mevcut çalışma, kolon kanseri hücrelerinde [6]-gingerol için tamamen farklı bir etki mekanizması tanımlamaktadır.

      [6]-gingerol tarafından AP-1 transkripsiyonel bağlanmasının aşağı regülasyonu, AP-1'in COX-2, MMP'ler ve VEGF gibi efektörlerin transkripsiyonundan sorumlu transkripsiyon faktörü olduğu bilindiğinden, bunun kolon kanserine karşı terapötik potansiyeline doğrudan işaret eder. bunlar kolon kanseri tümörlerinde invazivlik, metastaz ve anjiyogenezden sorumludur [46] , [54] . [6]-gingerol'ün daha önce cilt kanseri modelinde COX-2 ekspresyonunu inhibe ettiği gösterilmiştir [28] , [29] , ancak bugüne kadar bunların kolon kanserinde COX-2 üzerindeki etkileri çalışılmamıştır. Bu çalışmada SW-480, COX-2 negatif bir hücre dizisidir [58][6]-gingerol'den etkilenen MMP-9 veya VEGF gibi AP-1'in diğer aşağı akış efektörlerine sahip olabilir. MMP-9 ve MMP-2'nin [6]-gingerol tarafından aşağı regülasyonu sırasıyla karaciğer kanseri ve meme kanseri hücre dizilerinde rapor edilmiştir [9] , [50] . Zencefil bileşenlerinin ayrıca VEGF'yi inhibe ederek anjiyogenezi inhibe ettiği gösterilmiştir. yumurtalık kanseri hücrelerinde [29] , [59] .Bu çalışma [6]-gingerolün AP-1'in aşağı akış hedefleri üzerindeki etkisini araştırmamış olsa da, bu efektör moleküller üzerindeki etkilerini araştırmak için dikkat gerektirmektedir. kolon kanseri hücrelerinde. Mevcut çalışmadan elde edilen sonuçların in vivo olarak genişletilmesiçalışma, [6]-gingerol'ün biyoyararlanımı ve bunun kolon tümörogenezinin önlenmesindeki mekanik rolü hakkında değerli bilgiler sağlayacaktır.


      Git: Destek Bilgisi

      Sertifika S1


      Kurumsal Hayvan Etik Kurulu yaptırım yazısı.

      (DOCX)
      Ek veri dosyası için buraya tıklayın. (4,7M, docx)
      Git: teşekkürler


      Normal fare kolon hücrelerinin izolasyonunda değerli rehberliği için Dr. KB Harikumar'a ve teknik yardım için Dr. Vinod V, Dr. Vineshkumar TP ve Dr. Vinod Balachandran'a teşekkür ederiz.

      Git: Finansman Tablosu


      Yazarların bildirecek desteği veya finansmanı yok.

      Git: Veri kullanılabilirliği


      Yazarlar, bulguların altında yatan tüm verilerin kısıtlama olmaksızın tamamen mevcut olduğunu onaylar. İlgili tüm veriler kağıt içindedir.

      Git: Referanslar

      1. Chan DS, Lau R, Aune D, Vieira R, Greenwood DC, et al. (2011) Kırmızı ve işlenmiş et ve kolorektal kanser insidansı: ileriye dönük çalışmaların meta-analizi . PLoS Bir 6 : e20456. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      2. Magalhaes B, Peleteiro B, Lunet N (2012) Diyet kalıpları ve kolorektal kanser: sistematik inceleme ve meta-analiz . Eur J Cancer Önceki 21 : 15–23. [ PubMed ] [ Google Akademik ]
      3. Mayer RJ (2009) İlerlemiş kolorektal kanser için hedefe yönelik tedavi – daha fazlası her zaman daha iyi değildir . N Engl J Med 360 : 623–625. [ PubMed ] [ Google Akademik ]
      4. Krell J, Stebbing J (2012) Ginger: Kanser tedavisinin kökü mü? Lancet Oncol 13 : 235–236. [ PubMed ] [ Google Akademik ]
      5. Surh YJ, Lee E, Lee JM (1998) Kırmızı biber ve zencefilde bulunan bazı keskin içerik maddelerinin kemoprotektif özellikleri . Mutat Res 402 : 259–267. [ PubMed ] [ Google Akademik ]
      6. Baliga MS, Haniadka R, Pereira MM, D'Souza JJ, Pallaty PL, et al. (2011) Zencefilin ve fitokimyasallarının kemopreventif etkileri üzerine güncelleme . Crit Rev Food Sci Nutr 51 : 499–523. [ PubMed ] [ Google Akademik ]
      7. Shukla Y, Singh M (2007) Zencefilin kanseri önleyici özellikleri: kısa bir inceleme . Food Chem Toxicol 45 : 683–690. [ PubMed ] [ Google Akademik ]
      8. Chakraborty D, Bishayee K, Ghosh S, Biswas R, Mandal SK, et al. (2012) [6]-Gingerol, kanser hücrelerinde kaspaz 3'e bağlı apoptozu ve otofajiyi indükler: HeLa hücrelerinde ilaç-DNA etkileşimi ve belirli sinyal genlerinin ekspresyonu . Eur J Pharmacol 694 : 20–29. [ PubMed ] [ Google Akademik ]
      9. Lee HS, Seo EY, Kang NE, Kim WK (2008) [6]-Gingerol, MDA-MB-231 insan meme kanseri hücrelerinin metastazını inhibe eder . J Nutr Biochem 19 : 313–319. [ PubMed ] [ Google Akademik ]
      10. Shukla Y, Prasad S, Tripathi C, Singh M, George J, et al. (2007) [6]-gingerol ile apoptozla ilişkili proteinlerde testosteron aracılı değişikliklerin in vitro ve in vivo modülasyonu . Mol Nutr Food Res 51 : 1492–1502. [ PubMed ] [ Google Akademik ]
      11. Ju SA, Park SM, Lee YS, Bae JH, Yu R, ve diğerleri. (2012) 6-gingerol uygulaması, fare tümörlerinde tümöre sızan lenfositlerin sayısını büyük ölçüde artırır . Int J Cancer 130 : 2618–2628. [ PubMed ] [ Google Akademik ]
      12. Park KK, Chun KS, Lee JM, Lee SS, Surh YJ (1998) Zencefilin önemli bir keskin prensibi olan [6]-gingerol'ün forbol ester kaynaklı inflamasyon, epidermal ornitin dekarboksilaz aktivitesi ve cilt tümörü promosyonu üzerindeki inhibitör etkileri ICR farelerinde . Kanser Lett 129 : 139–144. [ PubMed ] [ Google Akademik ]
      13. Lee SH, Cekanova M, Baek SJ (2008) İnsan kolorektal kanser hücrelerinde 6-gingerol kaynaklı hücre büyümesinin durması ve apoptozda çoklu mekanizmalar rol oynar . Mol Carcinog 47 : 197–208. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      14. Jeong CH, Bode AM, Pugliese A, Cho YY, Kim HG, et al. (2009) [6]-Gingerol, lökotrien A4 hidrolazını hedefleyerek kolon kanseri büyümesini baskılar . Kanser Res 69 : 5584–5591. [ PubMed ] [ Google Akademik ]
      15. Lin CB, Lin CC, Tsay GJ (2012) 6-Gingerol, G2/M Tutuklamasının İndüksiyonu Yoluyla Kolon Kanseri Hücresi LoVo'nun Büyümesini Engeller . Kanıta Dayalı Tamamlayıcı Alternatif Med 2012 : 326096. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      16. Whitehead RH, Demmler K, Rockman SP, Watson NK (1999) Hem farelerden hem de insanlardan alınan normal kolonik mukozadan epitelyal hücrelerin klonojenik büyümesi . Gastroenteroloji 117 : 858–865. [ PubMed ] [ Google Akademik ]
      17. Weigmann B, Tubbe I, Seidel D, Nicolaev A, Becker C, et al. (2007) Mürin lamina propria mononükleer hücrelerinin kolonik dokudan izolasyonu ve müteakip analizi . Nat Protokolü 2 : 2307–2311. [ PubMed ] [ Google Akademik ]
      18. Anto RJ, Mukhopadhyay A, Shishodia S, Gairola CG, Aggarwal BB (2002) Sigara dumanı yoğunlaşması, nükleer transkripsiyon faktörü-kappaB'yi fosforilasyon ve IkappaB(alfa) bozunması yoluyla aktive eder: siklooksijenaz-2 indüksiyonu ile korelasyon . Karsinojenez 23 : 1511–1518. [ PubMed ] [ Google Akademik ]
      19. Bava SV, Sreekanth CN, Thulasidasan AK, Anto NP, Cheriyan VT, et al. (2011) Sinerjizmlerine katkıda bulunan kurkumin tarafından aşağı regüle edilen paklitaksel kaynaklı hayatta kalma sinyal olaylarında Akt yukarı ve MAPK'ler NF-kappaB'nin aşağısındadır . Int J Biochem Cell Biol 43 : 331–341. [ PubMed ] [ Google Akademik ]
      20. Bava SV, Puliappadamba VT, Deepti A, Nair A, Karunagaran D, et al. (2005) Zerdeçal tarafından taksol kaynaklı apoptozun hassaslaştırılması, nükleer faktör-kappaB ve serin/treonin kinaz Akt'ın aşağı regülasyonunu içerir ve tübülin polimerizasyonundan bağımsızdır . J Biol Chem 280 : 6301–6308. [ PubMed ] [ Google Akademik ]
      21. Puliyappadamba VT, Cheriyan VT, Thulasidasan AK, Bava SV, Vinod BS, et al. (2010) Akciğer kanseri hücrelerinde nikotin kaynaklı hayatta kalma sinyali, p53 durumlarına bağlıyken, kurkumin tarafından aşağı regülasyonu bağımsızdır . Mol Cancer 9 : 220. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
      22. Rickard KL, Gibson PR, Young GP, Phillips WA (1999) Protein kinaz C'nin aktivasyonu, in vitro olarak insan kolonik epitel hücrelerinde bütiratın neden olduğu farklılaşmayı ve yenilenmeyi arttırır . Karsinojenez 20 : 977–984. [ PubMed ] [ Google Akademik ]
      23. Kudinov Y, Wiseman CL, Kharazi AI (2003) LS1034 kolorektal karsinom hücre hattında MHC sınıf II moleküllerinin Phorbol miristate asetat ve Bryostatin 1 kurtarma IFN-gama indüklenebilirliği . Cancer Cell Int 3 : 4. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
      24. Yu R, Hebbar V, Kim DW, Mandlekar S, Pezzuto JM, et al. (2001) Resveratrol, mitojenle aktive olan protein kinaz yollarına müdahale ederek forbol esteri ve UV kaynaklı aktivatör protein 1 aktivasyonunu inhibe eder . Mol Pharmacol 60 : 217–224. [ PubMed ] [ Google Akademik ]
      25. Mowla S, Pinnock R, Leaner VD, Goding CR, Prince S (2011) TBX3'ün PMA kaynaklı yukarı regülasyonuna AP-1 aracılık eder ve meme kanseri hücre göçüne katkıda bulunur . Biochem J 433 : 145–153. [ PubMed ] [ Google Akademik ]
      26. Lallena MJ, Diaz-Meco MT, Bren G, Paya CV, Moscat J (1999) Protein kinaz C izoformları tarafından IkappaB kinaz beta aktivasyonu . Mol Cell Biol 19 : 2180–2188. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      27. Park KA, Byun HS, Won M, Yang KJ, Shin S ve diğerleri. (2007) Protein kinaz C'nin sürekli aktivasyonu, insan kolonik epitel hücrelerinde IKK-gama ve Hsp90 kompleksinin ayrışmasıyla nükleer faktör-kappaB sinyalini azaltır . Karsinojenez 28 : 71–80. [ PubMed ] [ Google Akademik ]
      28. Kim SO, Kundu JK, Shin YK, Park JH, Cho MH, et al. (2005) [6]-Gingerol, forbol esterle uyarılan fare derisinde p38 MAP kinaz ve NF-kappaB'nin aktivasyonunu bloke ederek COX-2 ekspresyonunu inhibe eder . Onkojen 24 : 2558–2567. [ PubMed ] [ Google Akademik ]
      29. Kim EC, Min JK, Kim TY, Lee SJ, Yang HO ve diğerleri. (2005) [6] Zencefilin keskin bir bileşeni olan Gingerol, in vitro ve in vivo anjiyogenezi inhibe eder . Biochem Biophys Res Commun 335 : 300–308. [ PubMed ] [ Google Akademik ]
      30. Yu Y, Zick S, Li X, Zou P, Wright B ve diğerleri. (2011) İnsanlarda zencefilin aktif bileşenlerinin farmakokinetiğinin incelenmesi . AAPS J 13 : 417–426. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      31. Zick SM, Djuric Z, Ruffin MT, Litzinger AJ, Normolle DP, et al. (2008) Sağlıklı insan deneklerde 6-gingerol, 8-gingerol, 10-gingerol ve 6-shogaol ve konjugat metabolitlerinin farmakokinetiği . Kanser Salgını Biyobelirteçleri Önceki 17 : 1930–1936. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      32. Jiang SZ, Wang NS, Mi SQ (2008) Sıçanlarda [6]-gingerolün plazma farmakokinetiği ve doku dağılımı . Biopharm Drug Dispos 29 : 529–537. [ PubMed ] [ Google Akademik ]
      33. Brown AC, Shah C, Liu J, Pham JT, Zhang JG, et al. (2009) Ginger'in (Zingiber officinale Roscoe) sıçan kolonik adenokarsinom hücrelerinin proliferasyonunu ve in vitro anjiyojenezi inhibe etmesi . Phytother Res 23 : 640–645. [ PubMed ] [ Google Akademik ]
      34. Bode AM, Ma WY, Surh YJ, Dong Z (2001) [6]-gingerol tarafından epidermal büyüme faktörü kaynaklı hücre transformasyonu ve aktivatör protein 1 aktivasyonunun inhibisyonu . Kanser Res 61 : 850–853. [ PubMed ] [ Google Akademik ]
      35. Lee E, Surh YJ (1998) Keskin vanilloidler, [6]-gingerol ve [6]-paradol tarafından HL-60 hücrelerinde apoptozun uyarılması . Kanser Lett 134 : 163–168. [ PubMed ] [ Google Akademik ]
      36. Park YJ, Wen J, Bang S, Park SW, Song SY (2006) [6]-Gingerol, mutant p53 eksprese eden pankreas kanseri hücrelerinin hücre döngüsü durmasını ve hücre ölümünü indükler . Yonsei Med J 47 : 688–697. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      37. Anto RJ, Mukhopadhyay A, Denning K, Aggarwal BB (2002) Curcumin (diferuloylmethane), kaspaz-8'in aktivasyonu, BID bölünmesi ve sitokrom c salınımı yoluyla apoptozu indükler: Bcl-2 ve Bcl-xl'in ektopik ekspresyonu ile baskılanması . Karsinojenez 23 : 143–150. [ PubMed ] [ Google Akademik ]
      38. Yang G, Zhong L, Jiang L, Geng C, Cao J ve ark. (2010) 6-gingerolün insan hepatomu G2 hücreleri üzerindeki genotoksik etkisi . Chem Biol Interact 185 : 12–17. [ PubMed ] [ Google Akademik ]
      39. Miao Y, Sun Y, Wang W, Du B, Xiao SE ve diğerleri. (2013) 6-Gingerol, kültürlenmiş insan saç foliküllerinde saç gövdesi büyümesini engeller ve farelerde saç büyümesini modüle eder . PLoS Bir 8 : e57226. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      40. Azzi A, Boscoboinik D, Hensey C (1992) Protein kinaz C familyası . Eur J Biochem 208 : 547–557. [ PubMed ] [ Google Akademik ]
      41. Nishizuka Y (1992) Fosfolipidlerin hidrolizi ve protein kinaz C'nin aktivasyonu ile hücre içi sinyalleşme . Bilim 258 : 607–614. [ PubMed ] [ Google Akademik ]
      42. Meyer E, Vollmer JY, Bovey R, Stamenkovic I (2005) Matrix metalloproteinazlar 9 ve 10, protein kinaz C ile güçlendirilmiş, p53 aracılı apoptozu inhibe eder . Kanser Res 65 : 4261–4272. [ PubMed ] [ Google Akademik ]
      43. Masur K, Lang K, Niggemann B, Zanker KS, Entschladen F (2001) Yüksek PKC alfa ve düşük E-cadherin ekspresyonu, kolon karsinoma hücrelerinin yüksek göç aktivitesine katkıda bulunur . Mol Biol Celi 12 : 1973–1982. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      44. Heider I, Schulze B, Oswald E, Henklein P, Scheele J, et al. (2004) PAR1 tipi trombin reseptörü, insan kolon karsinomu hücrelerinin PKCepsilon'a bağımlı bir mekanizma ile göçünü ve matris yapışmasını uyarır . Oncol Res 14 : 475–482. [ PubMed ] [ Google Akademik ]
      45. Ashida R, Tominaga K, Sasaki E, Watanabe T, Fujiwara Y, et al. (2005) AP-1 ve kolorektal kanser . Inflammopharmacology 13 : 113–125. [ PubMed ] [ Google Akademik ]
      46.​​Vaiopoulos AG, Papachroni KK, Papavassiliou AG (2010) Colon carcinogenesis: Learning from NF-kappaB and AP-1 . Int J Biochem Cell Biol 42 : 1061–1065. [ PubMed ] [ Google Akademik ]
      47. Cordero-Herrera I, Martin MA, Bravo L, Goya L, Ramos S (2013) Epicatechin gallate, insan kolon kanseri SW480 hücrelerinde p53 aktivasyonu ve p38 ve JNK'nın uyarılması yoluyla hücre ölümünü indükler . Nutr Cancer 65 : 718–728. [ PubMed ] [ Google Akademik ]
      48. Collett GP, Campbell FC (2004) Zerdeçal, HCT116 insan kolon kanseri hücrelerinde c-jun N-terminal kinaz bağımlı apoptozu indükler . Karsinojenez 25 : 2183–2189. [ PubMed ] [ Google Akademik ]
      49. Seo EY, Kim WK (2011) Kırmızı ginseng ekstresi kolon kanseri hücrelerinin metastazını in vitro ve in vivo olarak azaltmıştır . J Ginseng Res 35 : 315–324. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      50. Weng CJ, Chou CP, Ho CT, Yen GC (2012) 6-shogaol ve 6-gingerol tarafından insan hepatokarsinom hücre istilasını inhibe eden moleküler mekanizma . Mol Nutr Food Res 56 : 1304–1314. [ PubMed ] [ Google Akademik ]
      51. Bubici C, Papa S, Pham CG, Zazzeroni F, Franzoso G (2006) ROS ve JNK sinyalinin NF-kappaB aracılı kontrolü . Histol Histopathol 21 : 69–80. [ PubMed ] [ Google Akademik ]
      52. Chen F, Castranova V (2007) Nuclear factor-kappaB, takdir edilmeyen bir tümör baskılayıcı . Kanser Res 67 : 11093–11098. [ PubMed ] [ Google Akademik ]
      53. Basseres DS, Baldwin AS (2006) Onkojenik başlatma ve ilerlemede nükleer faktör-kappaB ve kappaB kinaz yollarının inhibitörü . Onkogen 25 : 6817–6830. [ PubMed ] [ Google Akademik ]
      54. Shaulian E, Karin M (2002) AP-1 hücre yaşamı ve ölümü düzenleyicisi olarak . Nat Cell Biol 4 : E131–136. [ PubMed ] [ Google Akademik ]
      55. Debruyne PR, Bruyneel EA, Li X, Zimber A, Gespach C, et al. (2001) Safra asitlerinin karsinojenezdeki rolü . Mutat Res 480–481 : 359–369. [ PubMed ] [ Google Akademik ]
      56. Cho HJ, Kang JH, Kwak JY, Lee TS, Lee IS, et al. (2007) Ascofuranone, Ras/Raf/MEK/ERK- ve Ap1'e bağlı mekanizmalar yoluyla PMA aracılı matris metaloproteinaz-9 gen aktivasyonunu baskılar . Karsinojenez 28 : 1104–1110. [ PubMed ] [ Google Akademik ]
      57. Han H, Du B, Pan X, Liu J, Zhao Q ve diğerleri. (2010) CADPE, FAK/MEK/ERK aracılı AP-1 aktivasyonu ile PMA ile uyarılan mide karsinomu hücre invazyonunu ve matris metaloproteinaz-9 ekspresyonunu inhibe eder . Mol Cancer Res 8 : 1477–1488. [ PubMed ] [ Google Akademik ]
      58. Shao J, Sheng H, Inoue H, Morrow JD, DuBois RN (2000) Kolon karsinom hücrelerinde konstitütif siklooksijenaz-2 ekspresyonunun düzenlenmesi . J Biol Chem 275 : 33951–33956. [ PubMed ] [ Google Akademik ]
      59. Rhode J, Fogoros S, Zick S, Wahl H, Griffith KA, et al. (2007) Zencefil, hücre büyümesini inhibe eder ve yumurtalık kanseri hücrelerinde anjiyojenik faktörleri modüle eder . BMC Tamamlayıcı Altern Med 7 : 44. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]

      Yorum yap


      • #4
        Zencefilin ( Zingiber officinale Roscoe ) vasküloprotektif etkileri ve altta yatan moleküler mekanizmalar

        Chao Li 1, Jie Li 1, Feng Jiang 2, Nikolay Tzvetkov 3, Jaroslaw O Hurbanczuk 4, Yunlun Li 5, Atanas G Atanasov 6, Dong Dong Wang 7
        üyelikler yıkılmak üyelikler

        • 1Deneysel merkez, Shandong Geleneksel Çin Tıbbı Üniversitesi, Jinan, 250355, Çin. yunlun.lee@hotmail.com.
        • 2Kardiyoloji Bölümü, Geleneksel Çin Tıbbı Shandong Üniversitesi Bağlı Hastanesi, Jinan, 250000, Çin.
        • 3Moleküler Biyoloji Enstitüsü "Roumen Tsanev", Biyokimyasal Farmakoloji ve İlaç Tasarımı Bölümü, Bulgaristan Bilimler Akademisi, Sofya, Bulgaristan. atanas.atanasov@univie.ac.at.
        • 4Moleküler Biyoloji Anabilim Dalı, Polonya Bilimler Akademisi Genetik ve Hayvan Yetiştiriciliği Enstitüsü, ul. Postepu 36A, 05-552 Jastrzębiec, Polonya.
        • 5Deneysel merkez, Shandong Geleneksel Çin Tıbbı Üniversitesi, Jinan, 250355, Çin. yunlun.lee@hotmail.com ve Kardiyoloji Bölümü, Geleneksel Çin Tıbbı Shandong Üniversitesi Bağlı Hastanesi, Jinan, 250000, Çin.
        • 6Moleküler Biyoloji Anabilim Dalı, Polonya Bilimler Akademisi Genetik ve Hayvan Yetiştiriciliği Enstitüsü, ul. Postepu 36A, 05-552 Jastrzębiec, Polonya ve Ludwig Boltzmann Dijital Sağlık ve Hasta Güvenliği Enstitüsü, Viyana Tıp Üniversitesi, Spitalgasse 23, 1090 Viyana, Avusturya ve Nörobiyoloji Enstitüsü, Bulgaristan Bilimler Akademisi, 23 Acad. G. Bonchevstr., 1113 Sofya, Bulgaristan ve Farmakognozi Bölümü, Viyana Üniversitesi, Althanstrasse 14, 1090 Viyana, Avusturya.
        • 7Metabolizma, Obezite ve Diyabet Araştırma Merkezi, Tıp Bölümü, McMaster Üniversitesi, Main Street West 1280, L8S4L8 Hamilton, Ontario, Kanada. dongdong.wang@usz.ch.
        Soyut

        Zencefil (Zingiber officinale Roscoe) yaygın ve yaygın olarak kullanılan bir baharattır. Fenolik bileşikler, terpenler, polisakkaritler, lipitler, organik asitler ve ham lifler dahil olmak üzere çeşitli kimyasal bileşenler açısından zengindir. Burada vasküler sistem üzerindeki etkilerini gözden geçirdik. Hücre kültürlerini veya hayvan modellerini kullanan araştırmalar, zencefil bileşenlerinin oksidatif stresi ve iltihabı hafiflettiğini, nitrik oksit sentezini artırdığını, vasküler düz kas hücresi çoğalmasını baskıladığını, makrofajlardan kolesterol akışını desteklediğini, anjiyogenezi inhibe ettiğini, voltaja bağlı Ca2+ kanallarını bloke ettiğini ve otofajiyi indüklediğini göstermiştir. Klinik deneylerde zencefilin serum lipidleri, enflamatuar sitokinler, kan basıncı ve trombosit agregasyonu üzerinde olumlu bir etkiye sahip olduğu gösterilmiştir. Birlikte alındıklarında,

        Yorum yap


        • #5
          Zingiber officinale Roscoe'nun Kimyasal Bileşenleri Üzerine Araştırma İlerlemesi

          Yan Liu , 1 Jincheng Liu , 2 ve Yongqing Zhang 1
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          1 Eczacılık Okulu, Shandong Geleneksel Çin Tıbbı Üniversitesi, Jinan 250355, Çin
          2 Kimya ve Kimya Mühendisliği Okulu, Shandong Teknoloji Üniversitesi, Zibo 255049, Çin
          Sorumlu yazar.
          Yongqing Zhang: moc.621@300226qyz
          Akademik Editör: Guiming Liu
          Git: Soyut

          Zingiber officinale Roscoe, gıda ve ilaç ürünlerinde yaygın olarak kullanılmaktadır ancak kozmetik ve günlük ihtiyaçlarda da kullanılabilir. Son yıllarda, birçok bilim insanı Zingiber officinale Roscoe'nun kimyasal bileşimini inceledi ; bu nedenle, Zingiber officinale Roscoe'nun kimyasal bileşimini bir makalede kapsamlı bir şekilde özetlemek gerekir. Bu makalenin amacı, Zingiber officinale Roscoe'nun kimyasal bileşenlerinin kapsamlı bir incelemesini sağlamaktır. Sonuçlar, Zingiber officinale Roscoe'nun 194 tür uçucu yağ, 85 tür zencefilol ve 28 tür diarilheptanoid bileşik içerdiğini ve bunların Zingiber officinale'nin daha sonraki uygulamaları için bir temel oluşturabileceğini göstermektedir.Roscoe.

          Git: 1. Giriş

          Zingiber officinale Roscoe (ZOR, ayrıca Çince'de Shengjiang), Zingiberaceae familyasından Pasifik Adalarına özgü çok yıllık bir bitkidir. Çin'in Shandong, Henan, Hubei, Yunnan, Guangdong, Sichuan ve Jiangsu eyaletlerinde bulunabilir. ZOR, sadece önemli bir çeşni değil, aynı zamanda klinik uygulamada en yaygın kullanılan Çin ilaçlarından biri olan zencefilin taze köküdür. Geleneksel Çin tıbbı, ZOR'un dış salgılama ve soğuğu dağıtma, kusmayı durdurma, balgam çözme ve öksürüğü giderme etkileri olduğuna ve balık ve yengeç zehiri, mide soğuk algınlığı ve kusma ve soğuk balgam öksürüğü tedavisinde kullanılabileceğine inanmaktadır [ 1]. Modern farmakolojik araştırmalar, ZOR'un sindirimi destekleyebildiğini, kan dolaşımını iyileştirebildiğini, kan lipitlerini düşürebildiğini, kan şekerini düşürebildiğini, vestibüler stimülasyonu rahatlatabildiğini ve antiinflamatuar, antitümör, antimikrobiyal ve antioksidan etkiler sağlayabildiğini göstermiştir [ 2 – 5 ]. ZOR, zengin aktif bileşenleri nedeniyle kozmetik [ 6 ], diş macunu [ 7 ] ve sağlıklı gıdalarda [ 8 – 10 ] kullanılmıştır.

          ZOR'un tüm geliştirme ve kullanımı, malzeme bileşimine dayanmaktadır. ZOR'un kimyasal bileşimi karmaşıktır, 300'den fazla tür içerir ve genel olarak üç kategoriye ayrılabilir: uçucu yağlar, zencefilol ve diarilheptanoidler [ 11 – 13 ]. Bu yazıda, ZOR'un mevcut araştırma literatürü sistematik olarak özetlenmekte ve kalite kontrol, yetiştirme üretimi ve ZOR'un daha fazla geliştirilmesi için referans sağlamak amacıyla her bir kimyasal bileşim ve kimyasal yapısı ayrıntılı olarak listelenmektedir.

          Git: 2. Bileşenler

          2.1. Uçucu Yağlar

          Zencefil esansiyel yağları olarak da bilinen uçucu yağlar genellikle terpenoidlerden oluşur [ 14 ]. Zencefil esansiyel yağları ZOR'a benzersiz bir aromatik koku verir [ 11 ]. Uçucu yağ bileşimi, ZOR'un hasat edildiği yere göre değişir. Halihazırda ZOR'un uçucu yağlarında tanımlanan içerikler ve bunların kimyasal yapıları aşağıda gösterilmiştir.tablo 1. tablo 1

          ZOR'da uçucu yağlar.
          1 terpen α -terpinen [ 15 ]
          2 terpen α -Terpineol [ 15 ]
          3 terpen 4-terpineol [ 15 ]
          4 terpen terpinolen [ 15 ]
          5 terpen γ -Terpinolen [ 15 ]
          6 Alkol sinema filmi [ 15 ]
          7 Alkol β- Eudesmol [ 15 ]
          8 Alkol Nerol [ 15 ]
          9 Alkol trans- Nerolidol [ 15 ]
          10 Alkol 4-İzopropilbenzil alkol [ 15 ]
          11 Alkol 3,7-Dimetilokta-1,6-dien-3-ol [ 15 ]
          12 Alkol 3,7-Dimetilokt-6-en-1-yn-3-ol [ 15 ]
          13 Alkol 3-Metilheksan-2-ol [ 15 ]
          14 Alkol cis- Piperitol [ 15 ]
          15 Alkol Borneol [ 15 ]
          16 Alkol Elemol [ 15 ]
          17 Alkol tau- Muurolol [ 15 ]
          18 Alkol 2-Metoksi-1,7,7-trimetilbisiklo[2.2.1]heptan [ 15 ]
          19 Alkol 1-İzopropil-4-metilsikloheks-3-enol [ 15 ]
          20 Alkol 2-tetradekanol [ 15 ]
          21 Alkol Myrtenol [ 15 ]
          22 Alkol sitronellol [ 15 ]
          23 Alkol sardunya [ 15 ]
          24 Alkol cis- Linalool oksit [ 15 ]
          25 Alkol 4-Ethoxybutan-1-ol [ 15 ]
          26 Alkol α- Eudesmol [ 15 ]
          27 Alkol Nerolidol [ 15 ]
          28 Alkol farnesol [ 15 ]
          29 Alkol trans -4-İzopropil-1-metil-2-sikloheksen-1-ol [ 15 ]
          30 Alkol cis -4-İzopropil-1-metil-2-sikloheksen-1-ol [ 15 ]
          31 Alkol 2-Heptanol [ 16 ]
          32 Alkol 1-Metoksi-2-metil [ 16 ]
          33 Alkol cis- Seskisabinen hidrat [ 17 ]
          34 Alkol cis- 2- p -Menthen-1-ol [ 17 ]
          35 Alkol endo-Borneol [ 17 ]
          36 Alkol trans -Sabinene hidrat [ 17 ]
          37 Alkol 2-Nonanol [ 18 ]
          38 Alkol propanol [ 18 ]
          39 Alkol cis-β- Sesquiphellandrol [ 18 ]
          40 Alkol trans-β -Sesquiphellandrol [ 18 ]
          41 Alkol β- Santalol [ 19 ]
          42 Alkol Zingiberol [ 19 ]
          43 Alkol tau- Cadinol [ 20 ]
          44 Alkol Zingiberenol [ 21 ]
          45 Alkol 2-Pinen-5-ol [ 21 ]
          46 Alkol Bornil metil eter [ 21 ]
          47 Alkol izoborneol [ 22 ]
          48 Alkol 2-Dekanol [ 22 ]
          49 Alkol fenkol [ 22 ]
          50 Alkol linalool [ 23 ]
          51 Alkol Plinol [ 23 ]
          52 Alkol kamfenol [ 23 ]
          53 Alkol trans- 2-Decen-1-ol [ 23 ]
          54 Alkol Hentriakontanol [ 24 ]
          55 Alkol 10-O- β -D-Glukopiranosil-hidroksil sineol [ 25 ]
          56 aldoketon bütanal [ 15 ]
          57 aldoketon Germakron [ 15 ]
          58 aldoketon 2,6-Dimetilhept-5-enal [ 15 ]
          59 aldoketon 2-Heptanon [ 15 ]
          60 aldoketon (E)-Citral [15]
          61 Aldoketone (Z)-Citral [15]
          62 Aldoketone 2-Nonanone [15]
          63 Aldoketone 3-((3E,5E)-Deca-3,5-dienyl)cyclopentanone [15]
          64 Aldoketone β-Cyclocitral [15]
          65 Aldoketone 2-Undecanone [15]
          66 Aldoketone 1,7,7-Trimethylbicyclo[2.2.1]heptan-2-one [15]
          67 Aldoketone (1R)-(–)-Myrtenal [15]
          68 Aldoketone β-Citronellal [15]
          69 Aldoketone Crypton [15]
          70 Aldoketone 4-Isopropylcyclohex-2-enone [15]
          71 Aldoketone Camphor [15]
          72 Aldoketone 6-Methyl-5-hepten-2-one [15]
          73 Aldoketone trans,trans-Farnesal [15]
          74 Aldoketone Hexanal [16]
          75 Aldoketone Neral [17]
          76 Aldoketone Geranial [17]
          77 Aldoketone Octanal [17]
          78 Aldoketone Methyl heptenone [18]
          79 Aldoketone Nonyl aldehyde [18]
          80 Aldoketone Acetaldehyde [18]
          81 Aldoketone Propionaldehyde [18]
          82 Aldoketone Valeraldehyde [18]
          83 Aldoketone Perillal [19]
          84 Aldoketone (E)-Dodec-2-enal [21]
          85 Aldoketone (Z)-3,7-Dimethylocta-3,6-dienal [21]
          86 Aldoketone (E)-3,7-Dimethylocta-3,6-dienal [21]
          87 Aldoketone (E)-Dec-2-enal [21]
          88 Aldoketone Decanal [23]
          89 Aldoketone Citronella [23]
          90 Aldoketone 2-Octenal [21]
          91 Aldoketone Octanal [26]
          92 Aldoketone Acetone [26]
          93 Acid L-Bornyl acetate [15]
          94 Acid Geranic acid [15]
          95 Acid Undecanoic acid [16]
          96 Ester Neryl acetate [15]
          97 Ester Methyl 11-(cyclopent-2-enyl)undecanoate [15]
          98 Ester Geranyl propionate [15]
          99 Ester endo-Bornyl acetate [15]
          100 Ester sec-Butyl acetate [15]
          101 Ester 3,7-Dimethyl-2,6-octadienyl acetate [15]
          102 Ester Neryl propionate [15]
          103 Ester Geraniol formate [15]
          104 Ester Myrtenyl acetate [15]
          105 Ester Geranyl acetate [15]
          106 Ester Formic acid ethyl ester [16]
          107 Ester Ethyl butanoate [17]
          108 Ester Citronellyl acetate [17]
          109 Ester Heptyl acetate [17]
          110 Ester Methyl acetate [18]
          111 Ester Ethyl acetate [18]
          112 Ester Butyl acetate [21]
          113 Ester 2-Octyl acetate [21]
          114 Fat hydrocarbon allo-Aromadendrene [15]
          115 Fat hydrocarbon β-Sesquiphellandrene [15]
          116 Fat hydrocarbon α-Cedrene [15]
          117 Fat hydrocarbon β-Thujene [15]
          118 Fat hydrocarbon Cadina-5,8-diene [15]
          119 Fat hydrocarbon Bicyclo[2.2.1]heptane [15]
          120 Fat hydrocarbon (E)-2,7-Dimethyloct-3-en-5-yne [15]
          121 Fat hydrocarbon (Z)-2,6-Dimethylocta-2,6-diene [15]
          122 Fat hydrocarbon (E)-3,7-Dimethylocta-1,3,6-triene [15]
          123 Fat hydrocarbon β-Phellandrene [15]
          124 Fat hydrocarbon α-Bergamotene [15]
          125 Fat hydrocarbon α-Gurjunene [15]
          126 Fat hydrocarbon Sabinene [15]
          127 Fat hydrocarbon (+)-Cyclosativene [15]
          128 Fat hydrocarbon (Z)-β-Farnesene [15]
          129 Fat hydrocarbon (E)-β-Farnesene [15]
          130 Fat hydrocarbon (Z,Z)-α-Farnesene [15]
          131 Fat hydrocarbon Zingiberene [15]
          132 Fat hydrocarbon α-Farnesene [15]
          133 Fat hydrocarbon (E)-5-Methylocta-1,6-diene [15]
          134 Fat hydrocarbon 5-Methyloct-3-yne [15]
          135 Fat hydrocarbon 7-Methylocta-3,4-diene [15]
          136 Fat hydrocarbon γ-Elemene [15]
          137 Fat hydrocarbon γ-Humulene [15]
          138 Fat hydrocarbon Thujopsene [15]
          139 Fat hydrocarbon β-Elemene [15]
          140 Fat hydrocarbon β-Bisabolene [15]
          141 Fat hydrocarbon α-Pinene [15]
          142 Fat hydrocarbon β-Pinene [15]
          143 Fat hydrocarbon Caryophyllene [15]
          144 Fat hydrocarbon β-Caryophyllene [15]
          145 Fat hydrocarbon Tricyclene [15]
          146 Fat hydrocarbon Moslene [15]
          147 Fat hydrocarbon Cedrene [15]
          148 Fat hydrocarbon (–)-allo-Aromadendrene [15]
          149 Fat hydrocarbon Neoclovene [15]
          150 Fat hydrocarbon 3-Octyne [15]
          151 Fat hydrocarbon 1-Octene [15]
          152 Fat hydrocarbon β-Myrcene [15]
          153 Fat hydrocarbon β-Eudesmene [15]
          154 Fat hydrocarbon Eudesma-3,7(11)-diene [15]
          155 Fat hydrocarbon Caryophyllene [15]
          156 Fat hydrocarbon Bicyclo[3.1.1]heptane [15]
          157 Fat hydrocarbon 1-Cyclopropylpentane [15]
          158 Fat hydrocarbon 3-Carene [15]
          159 Fat hydrocarbon 2-Carene [15]
          160 Fat hydrocarbon (+)-Aromadendrene [15]
          161 Fat hydrocarbon Fenchene [16]
          162 Fat hydrocarbon δ-Elemene [17]
          163 Fat hydrocarbon D-Limonene [18, 22]
          164 Fat hydrocarbon β-Phellandrene [18, 26]
          165 Fat hydrocarbon 10-Epizonarene [18]
          166 Fat hydrocarbon Octane [18]
          167 Fat hydrocarbon Nonane [18]
          168 Fat hydrocarbon α-Bergamotene [19]
          169 Fat hydrocarbon β-Bisabolene [20]
          170 Fat hydrocarbon τ-Epi-α-selinene [20]
          171 Fat hydrocarbon 4-Carene [22]
          172 Fat hydrocarbon Camphene [23]
          173 Fat hydrocarbon α-Phellandrene [23]
          174 Fat hydrocarbon (Z)-3,7-Dimethylocta-1,3,6-triene [27]
          175 Fat hydrocarbon Germacrene [27]
          176 Fat hydrocarbon δ-Cadinene [26]
          177 Fat hydrocarbon α-Cubebene [26]
          178 Fat hydrocarbon α-Copaene [26]
          179 Arene α-Curcumene [15]
          180 Arene 2-Isopropyltoluene [15]
          181 Arene o-Cymene [15]
          182 Arene Styrene [17]
          183 Arene Methylbenzene [17]
          184 Arene Cumene [18]
          185 Arene p-Cymene [19]
          186 Others p-Cymen-8-ol [15]
          187 Others 2-Acetoxy-1,8-cineole [17]
          188 Others Diethyl sulphide [18]
          189 Others Ethyl isopropyl sulphide [18]
          190 Others Methyl allyl sulphide [18]
          191 Others Dibutyl phthalate [20]
          192 Others 2-(3′-Methyl-2′-butenyl)-3-methylfuran [21]
          193 Others Isoeugenol [21]
          194 Others 2-(2′,3′-Epoxy-3′-methylbutyl)-3-methylfuran [21]
          Ayrı bir pencerede aç 2.2. zencefil

          Gingerol, ZOR'un baharatlı bileşenidir. Hepsi 3-metoksi-4-hidroksifenil fonksiyonel grubu içeren çeşitli maddelerin bir karışımıdır. Gingeroller, bu fonksiyonel grup tarafından bağlanan farklı yağ zincirlerine göre, zencefiloller, shogaoller, paradoller, zingeronlar, zencefiller ve zencefildioller olarak ayrılabilir [ 28 , 29 ]. Yapısal formüller şu şekilde verilir:Tablo 2. Tablo 2

          ZOR'daki zencefiller.
          195 3-Gingerol H H — 1 [ 30 ]
          196 4-Gingerol H H — 2 [ 30 ]
          197 5-Gingerol H H — 3 [ 30 ]
          198 6-Gingerol H H — 4 [ 31 , 32 ]
          199 8-Gingerol H H — 6 [ 31 , 33 ]
          200 10-Gingerol H H — 8 [ 33 ]
          201 12-Gingerol H H — 10 [ 31 , 32 ]
          202 5-Metoksi-6-gingerol H Kanal 3 — 4 [ 34 ]
          203 Asetoksi-4-gingerol H KOÇ 3 — 2 [ 34 ]
          204 Asetoksi-6-gingerol H KOÇ 3 — 4 [ 35 ]
          205 Asetoksi-8-gingerol H KOÇ 3 — 6 [ 34 ]
          206 Asetoksi-10-gingerol H KOÇ 3 — 8 [ 34 ]
          207 4-Gingeril metil eter Kanal 3 H — 2 [ 34 ]
          208 6-Gingeril metil eter Kanal 3 H — 4 [ 34 ]
          209 6-Gingeril metil eter asetat Kanal 3 KOÇ 3 — 4 [ 34 ]
          210 6-Gingeril diasetat KOÇ 3 KOÇ 3 — 4 [ 36 ]
          211 8-Gingeril diasetat KOÇ 3 KOÇ 3 — 6 [ 36 ]
          212 10-Gingeril diasetat KOÇ 3 KOÇ 3 — 8 [ 36 ]
          213 Zingeron H — — 0 [ 36 ]
          214 1-Paradol H — — 1 [ 20 ]
          215 2-Paradol H — — 2 [ 20 ]
          216 3-Paradol H — — 3 [ 20 ]
          217 4-Paradol H — — 4 [ 20 ]
          218 6-Paradol H — — 6 [ 36 , 37 ]
          219 7-Paradol H — — 7 [ 20 ]
          220 8-Paradol H — — 8 [ 36 ]
          221 9-Paradol H — — 9 [ 20 ]
          222 10-Paradol H — — 10 [ 36 ]
          223 11-Paradol H — — 11 [ 34 ]
          224 13-Paradol H — — 13 [ 34 ]
          225 Metil-6-paradol Kanal 3 — — 6 [ 34 , 38 ]
          226 Methyl-8-paradol CH3 — — 8 [39]
          227 Zingerone acetate COCH3 — — 0 [36]
          228 6-Paradyl monoacetate COCH3 — — 6 [34]
          229 8-Paradyl monoacetate COCH3 — — 8 [36]
          230 6-Paradyl benzoate COPh — — 6 [36]
          231 1-Dehydro-3-gingerdione — — — 1 [34]
          232 1-Dehydro-6-gingerdione — — — 4 [35, 40]
          233 1-Dehydro-8-gingerdione — — — 6 [35, 41]
          234 1-Dehydro-10-gingerdione — — — 8 [37, 42]
          235 12-Dehydrogingerdione — — — 10 [43]
          236 6-Gingerdione — — — 4 [44]
          237 10-Gingerdione — — — 8 [45]
          238 4-Shogaol H — — 2 [30, 44]
          239 5-Shogaol H — — 3 [39]
          240 6-Shogaol H — — 4 [35, 37]
          241 8-Shogaol H — — 6 [36, 37]
          242 10-Shogaol H — — 8 [36, 37]
          243 12-Shogaol H — — 10 [30, 44]
          244 Methyl-4-shogaol CH3 — — 2 [39]
          245 Methyl-6-shogaol CH3 — — 4 [34]
          246 Methyl-8-shogaol CH3 — — 6 [34]
          247 4-Gingerdiol H H H 2 [30]
          248 6-Gingerdiol H H H 4 [44]
          249 8-Gingerdiol H H H 6 [44]
          250 10-Gingerdiol H H H 8 [44]
          251 5-Acetoxy-4-gingerdiol H COCH3 H 2 [34]
          252 5-Acetoxy-6-gingerdiol H COCH3 H 4 [46]
          253 5-Acetoxy-7-gingerdiol H COCH3 H 5 [34]
          254 Diacetoxy-4-gingerdiol H COCH3 COCH3 2 [46, 47]
          255 Diacetoxy-6-gingerdiol H COCH3 COCH3 4 [46, 47]
          256 Methyl-5-acetoxy-4-gingerdiol CH3 COCH3 H 2 [34]
          257 Methyl-5-acetoxy-6-gingerdiol CH3 COCH3 H 4 [34]
          258 Methyl diacetoxy-4-gingerdiol CH3 COCH3 COCH3 2 [34]
          259 Methyl diacetoxy-6-gingerdiol CH3 COCH3 COCH3 4 [34]
          260 Methyl diacetoxy-10-gingerdiol CH3 COCH3 COCH3 8 [34]
          261 6-Dihydroparadol H — — 6 [34]
          262 Acetoxy-6-dihydroparadol Ac — — 6 [34]
          263 1-(4′-Hydroxy-3′-methoxypheny-l)-7-octen-3-one H — — — [34]
          264 1-(4′-Hydroxy-3′-methoxypheny-l)-7-decen-3-one CH2CH3 — — — [34]
          265 1-(4′-Hydroxy-3′-methoxypheny-l)-7-dodecen-3-one (CH2)3CH3 — — — [34]
          266 4-Isogingerol H — — 2 [34]
          267 6-Isogingerol H — — 4 [48]
          268 Methyl-6-isogingerol CH3 — — 4 [34]
          269 6-Zingerine — — — 4 [49]
          270 8-Zingerine — — — 6 [49]
          271 10-Zingerine — — — 8 [49]
          272 3-Dihydro-6-demethoxy shogaol — — — — [34]
          273 6-Isoshogaol — — — — [44]
          274 Dehydrozingerone — — — — [36]
          275 1-Dehydro-3-dihydro-10-gingerdione — — — — [ 34 , 44 ]
          276 ( Z )-10-Isoshogaol — — — — [ 48 ]
          277 ( E )-10-Isoshogaol — — — — [ 48 ]
          278 β -Sitosterol — — — — [ 50 , 51 ]
          279 tetrakosanoik asit — — — — [ 50 , 52 ]
          Ayrı bir pencerede aç 2.3. diarilheptanoidler

          Diarilheptanoid, ana yapısında 1,7-disübstitüe fenil grupları ve heptan iskeletleri bulunan bir bileşikler grubudur. Şu anda, antioksidan aktiviteye sahip lineer difenil heptan ve siklik difenil heptan bileşikleri olarak ayrılabilir [ 53 ]. Yapısal formüller,Tablo 3. Tablo 3

          ZOR'daki diarilheptanoidler.
          280 5-Hidroksi-1-(4'-hidroksi-3'-metoksifenil)-7-(4"-hidroksifenil)heptan-3-on H H H [ 32 ]
          281 5-Hidroksi-1,7-bis(4'-hidroksi-3'-metoksifenil)heptan-3-on H OK 3 H [ 32 ]
          282 7-(3',4'-Dihidroksi-5'-metoksifenil)-5-hidroksi-1-(4"-hidroksi-3"-metoksifenil)heptan-3-on H OK 3 AH [ 54 ]
          283 5-Hidroksi-7-(4'-hidroksi-3',5'-dimetoksifenil)-1-(4"-hidroksi-3"-metoksifenil)heptan-3-on H OK 3 OK 3 [ 32 ]
          284 5-Hidroksi-1-(4'-hidroksi-3',5'-dimetoksifenil)-7-(4"-hidroksi-3"-metoksifenil)heptan-3-on OK 3 OK 3 H [ 55 ]
          285 5-Hidroksi-1,7-bis(4'-hidroksi-3',5'-dimetoksifenil)heptan-3-on OK 3 OK 3 OK 3 [ 32 ]
          286 (E) -7-(3',4'-Dihidroksifenil)-1-(4"-hidroksi-3"-metoksifenil)hept-4-en-3-on H — V [ 55 ]
          287 1,7-bis(4'-Hidroksi-3'-metoksifenil)-4-hepten-3-on Kanal 3 — — [ 55 , 56 ]
          288 3,5-Dihidroksi-1,7-bis(4'-hidroksi-3'-metoksifenil)heptan H H Kanal 3 [ 54 – 56 ]
          289 1,7-bis(3',4'-Dihidroksifenil)-3,5-diasetat heptan KOÇ 3 H H [ 55 ]
          290 1,7-bis(4'-Hidroksi-3'-metoksifenil)-3,5-diasetat heptan KOÇ 3 H Kanal 3 [ 55 – 57 ]
          291 1,7-bis(4'-Metoksi-3'-asetatfenil)-3,5-diasetat heptan KOÇ 3 Kanal 3 KOÇ 3 [ 55 ]
          292 1,7-bis(3',4'-Diasetatfenil)-3,5-diasetat heptan KOÇ 3 KOÇ 3 KOÇ 3 [ 55 ]
          293 5-(6-(4-Hidroksi-3-metoksifenetil)-4-hidroksi-tetrahidro-2H-piran-2-il)-3-metoksibenzen-1,2-diol H — — [ 54 , 58 ]
          294 2-(4'-Hidroksi-3'-metoksifenetil)-6-(3",4"-dihidroksi-5"-metoksifenil)-tetrahidro-2H-piran-4-il asetat KOÇ 3 — — [58]
          295 7-(3′,4′-Dihydroxyphenyl)-1-(4″-hydroxy-3″-methoxyphenyl)-3,5-diacetate heptane H H — [55]
          296 7-(4′-Hydroxy-3′-methoxyphenyl)-1-(4″,5″-dihydroxy-3″-methoxyphenyl)-3,5-diacetate heptane OH CH3 — [54]
          297 7-(4′-Hydroxy-3′-methoxyphenyl)-1-(4″-hydroxy-5″-methyl-3″-methoxyphenyl)-3,5-diacetate heptane CH3 CH3 — [55]
          298 7-(4′-Hydroxy-3′-methoxyphenyl)-1-(4″-hydroxy-3″,5″-dimethoxyphenyl)-3,5-diacetate heptane OCH3 CH3 — [55, 56]
          299 5-(6-(4-Hydroxyphenethyl)-4-hydroxy-tetrahydro-2H-pyran-2-yl)-3-methoxybenzene-1,2-diol H H H [25]
          300 5-(6-(4-Hydroxy-3-methoxyphenethyl)-4-hydroxy-tetrahydro-2H-pyran-2-yl)-3-methoxybenzene-1,2-diol H H OCH3 [54, 58]
          301 5-(6-(4-Hydroxy-3-methoxyphenethyl)-4-hydroxy-tetrahydro-2H-pyran-2-yl)-2-hydroxy-3-methoxyphenyl acetate H COCH3 OCH3 [58]
          302 2-(4′-Hydroxy-3′-methoxyphenethyl)-6-(3″,4″-dihydroxy-5″-methoxyphenyl)-tetrahydro-2H-pyran-4-yl acetate COCH3 H OCH3 [58]
          303 1,7-bis(4′-Hydroxy-3′-methoxyphenyl)-5-oxoheptan-3-yl acetate H — — [57]
          304 1,7-bis(3′-Methoxy-4′-acetatephenyl)-5-oxoheptan-3-yl acetate COCH3 — — [57]
          305 1,7-bis(4′-Hydroxy-3′-methoxyphenyl)-3,5-heptadione — — — [34]
          306 (1E,6E)-1,7-bis(4-Hydroxy-3-methoxyphenyl)hepta-1,6-diene-3,5-dione — — — [56]
          307 2,4-bis(3,4-Dihidroksifenetil)pentandioik asit — — — [ 59 ]
          Ayrı bir pencerede aç 2.4. Diğerleri

          2.4.1. Proteinler ve Amino Asitler

          ZOR, glutamat, aspartik asit, serin, glisin, treonin, alanin, sistin, valin, metiyonin, izolösin, lösin, tirozin, fenilalanin, lizin, histidin, arginin, prolin [ 22 , 60 ] ve triptofan [ 51 ].

          2.4.2. şekerler

          ZOR ayrıca polisakkaritler [ 44 ], selüloz ve çözünür şeker içerir.

          2.4.3. Organik Asitler

          ZOR oksalik asit, tartarik asit, laktik asit, asetik asit, sitrik asit, süksinik asit, formik asit ve malonik asit içerir [ 61 ].

          2.4.4. İnorganik Elementler

          ZOR'un K, Mg, Ga, Mn, P, Al, Zn, Fe ve Ba [ 44 ] gibi 20'den fazla inorganik element içerdiği gösterilmiştir .

          Git: 3. Tartışma

          Çeşitli zencefillerin farklı bölgeleri ve kimyasal bileşimleri vardır. Jolad [ 30 ] Çin beyaz zencefilinden ve Japon zerdeçalından elde edilen diklorometan özleri üzerinde kantitatif analiz yaptı ve en yüksek 6-gingerol içeriğinin sırasıyla %28 ve %34 olduğunu buldu. Sonraki en yüksek konsantrasyonlar 8-gingerol ve 10-gingerol idi ve en düşük 6-shogaol içeriği sadece %0.35 idi. Onyenekwe [ 62 ] Nijerya zencefilinin uçucu yağlarının ana bileşenlerinin zingiberen (%29.5) ve β- gibi terpenoidler olduğunu belirlemiştir.sesquiphellandrene (% 18.4), diğer bölgelerde yetişen zencefillerden oldukça farklıydı. Başka bir çalışma, Çin'in beş farklı bölgesinde (Shandong Laiwu, Anhui Tongling, Shandong Anqiu, Guangdong Guangzhou ve Hunan Rucheng) yetiştirilen zencefilin uçucu yağ içeriğinin %0.13, %0.23, %0.30, %0.14 ve %0.17 olduğunu göstermiştir. 63 ], sırasıyla. 6-Gingerol genellikle zencefil için kalite standardıdır ve Sichuan Eyaleti, Qianwei'de bulunan zencefil, Çin Halk Cumhuriyeti'nin farmakope standardından daha yüksek etkili 6-gingerol içeriği gösterir [ 64 , 65 ]. Çin'in farklı bölgelerinde yetişen zencefilin 6-gingerol ve 6-zingiberol konsantrasyonları, büyüme ortamıyla ilgili olabilecek şekilde büyük ölçüde değişir [ 66]. Olgun ve taze zencefil özleri aynı kimyasal bileşenleri içerir, ancak fark, her bileşenin nispi içeriğindedir. Olgun zencefildeki zencefil oleoresini, taze zencefildekinden önemli ölçüde daha yüksektir. Aromatik terpenoidlerde, olgun zencefildeki 2-asetoksi-1,8-sineol, β- sitronelal, sitral, geraniol, geranil asetat ve zingiberen içerikleri taze zencefildekinden daha düşüktür. Olgun zencefildeki nispi α -curcumene içeriği, taze zencefildekinden daha yüksekti. Baharatlı zencefilol bileşiklerinde, olgun zencefildeki nispi zencefilol içeriği, taze zencefildekinden daha yüksektir; bu, ikinci yılda olgun zencefilin sürekli büyümesi sürecinde zencefilol bileşenlerinin daha fazla sentezinin ve birikmesinin bir sonucu olabilir [ 48]. Yağ içeriği en yüksek zencefil çeşitleri sırasıyla %4,56, %4,42, %4,52, %4,50 ve %4,35 konsantrasyonlarıyla Laiwu zencefili, Japon zencefili, Shannong 1 zencefili, Shannong 2 zencefili ve Anqiu büyük zencefilidir. Jinchang zencefilinde ve Chinger'de sırasıyla %3.45 ve %3.16 ortalama yağ içeriği bulundu. En düşük yağ çıkarma oranları, sırasıyla %2.95, %2.60 ve %1.55 olan Anqiu küçük zencefil, Fangzhou zencefil ve Jinshi zencefilde bulundu [ 48 ].

          Bir tür gıda ve ilaç olarak zencefil, antioksidan, antienflamatuar, antimikrobiyal, antikanser, antiobezite, antidiyabetik, antibulantı, antiemetik, antialerjik, nöroprotektif, hepatoprotektif, kardiyovasküler koruyucu ve solunum koruyucu aktiviteler gibi birçok fonksiyona sahiptir . . Şu anda, zencefilin biyoaktif bileşenleriyle ilgili çoğu çalışma, zencefil uçucu yağı, gingerol, shogaol ve zingerone bileşiklerine odaklanmaktadır. Zencefil esansiyel yağı, karaciğerin antioksidan kapasitesini etkili bir şekilde artırabilir, enflamatuar yanıtı azaltabilir ve yağlı karaciğere karşı koruma sağlayabilir [ 68 ]. Zencefildeki antioksidan bileşikler öncelikle zencefilol ve diarilheptanoiddir. Alkil zincirleri üzerindeki sübstitüentler, serbest radikallerin temizlenmesine ve lipitlerin oksidasyon inhibisyonuna katkıda bulunur [ 69]. Antioksidan aktivite tipik olarak zencefilollerden, shogaollerden ve bazı ilgili fenolik keton türevlerinden türetilir [ 70 ]. Gingeroller, 6-gingerolün en yüksek biyolojik aktiviteyi gösterdiği baharatlı bileşenlerdir, bu nedenle 6-gingerol genellikle zencefil kalitesinin bir göstergesi olarak kullanılır [ 71 ]. 6-Gingerol, in vivo ve in vitro anjiyogenezi inhibe etmek için kullanılmıştır [ 72 ]. Merkezi sinir stimülasyonunu ve çeşitli farmakolojik aktiviteleri baskılarken antikanser ve antigastrik ülser özelliklerine sahip olduğu gösterilmiştir [ 73 , 74 ].]. 6-Gingerol, tümör hücresi genlerinin anormal ifadesini tersine çevirerek apoptoz genini düzenleyerek tümörleri tedavi etmek için kullanılmıştır. Ayrıca apoptoz sinyal iletim yolunu etkileyebilir ve apoptozu indükleyebilir [ 75 ]. 8-Gingerol ve 10-gingerol, çeşitli tümör hücrelerinin aktivitesi üzerinde iyi inhibitör etkilere sahiptir, burada inhibitör etkiler biraz farklıdır. İkisi, MAPK yolu proteinleri ERK ve P38'in fosforilasyon seviyesini etkileyerek meme kanseri hücrelerinin G1 fazı durmasına yol açarak tümör hücrelerinin proliferasyonu üzerinde inhibe edici etkiler uygulayabilir [ 76 ]. Güçlü kalbin ana bileşenleri, zencefilol ve 6-shogaol [ 77]. 6-gingerol ve 6-shogaol'ün kan basıncı üzerindeki etkilerinin düşük dozlarda hipotansif bir etki oluşturduğu, yüksek dozlarda ise üç fazlı bir reaksiyon gösterdiği gösterilmiştir. Başlangıçta kan basıncı hızla düşer, sonra yükselir ve daha sonraki aşamalarda hipotansif etki sağlar [ 78 ]. Zencefil polisakkaridi, antitümör, hipoglisemik, lipid düşürücü, bağışıklık düzenleme, antivirüs ve antiyorgunluk gibi biyolojik aktivitelere sahiptir [ 79 ].

          Git: 4. Sonuç

          ZOR, klinik ve günlük yaşamda yaygın olarak kullanılan bir ilaç ve besindir ve sindirim, dolaşım, solunum ve merkezi sinir sistemi hastalıkları ile diğer hastalıkların önlenmesi ve tedavisinde kullanılmıştır. Bu yazıda, son yıllarda ZOR'da bulunan kimyasal bileşenler özetlenmiştir ve sonuçlar, ZOR özlerinden 194 tür uçucu yağ, 85 tür zencefilol ve 28 tür olmak üzere 300'den fazla kimyasal bileşenin tanımlandığını göstermektedir. diarilheptanoid bileşikleri. Buradan ZOR'un karmaşık bir kimyasal bileşime sahip olduğu açıkça görülmektedir. Bileşenler arasındaki etkileşimler klinik etkileri sağlar; bu nedenle, daha fazla uygulama için zencefilin kimyasal bileşimini ve farmakolojik etkisini daha fazla incelemek gerekir. Farklı bileşenlerin aynı etkileri gerçekleştirdiği mekanizmayı keşfetmek, gelecekte ilaç geliştirmenin yeni bir yoludur; örneğin 4-terpineol ve beta-sitosterol, sırasıyla 5-hidroksitriptamin reseptörü 3A ve mu-tipi opioid reseptörünün iki hedefi üzerinde hareket edebilir ve ishal ve dizanteri üzerinde karşılık gelen terapötik etkiler sağlayabilir. Bu, yeni ilaçların araştırılması ve geliştirilmesi için fikir sağlayabilir ve ZOR'un sonraki uygulamaları için bir temel oluşturabilir.

          Git: teşekkürler

          Bu çalışma, Shandong Eyaletinin Anahtar Araştırma ve Geliştirme Teknolojisi (Endüstri Anahtar Teknolojisi) (2016CYJS08A01) tarafından mali olarak desteklenmiştir.

          Git: Çıkar çatışmaları

          Yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler.

          Git: Referanslar

          1. Ulusal Farmakope Komisyonu. Çin Halk Cumhuriyeti Farmakopesi: 2015 Sürümü . Pekin, Çin: China Pharmaceutical Science and Technology Press; 2015. [ Google Akademik ]
          2. Wang XF, Wu GT, Niu TH ve diğerleri. Zencefilin kimyası, farmakolojisi ve uygulaması. Çin Meyve ve Sebzeleri . 2016; 36 (6):23–29. [ Google Akademik ]
          3. Hu WY, Zhang RP, Tang LP ve diğerleri. Zencefil üzerinde kimyasal ve farmakolojik araştırmalardaki gelişmeler. Çin Halk Tıbbı . 2008; 9 :10–14. [ Google Akademik ]
          4. Zhu MM, Liu D., Lu KX ve ark. Zencefilli yabanturpunun farmakolojik etkisine ilişkin araştırma ilerlemesi. Hubei Tıp Enstitüsü Dergisi . 2018; 37 (4):390–394. [ Google Akademik ]
          5. Sun YJ Ginger'ın farmakolojik etkisine ilişkin araştırma ilerlemesi. Modern Entegre Çin ve Batı Tıbbı Dergisi . 2007; 16 (4):561–564. [ Google Akademik ]
          6. Chen Y., Ni YY, Cai TY Zencefil ekstraktının kapsamlı kullanımı ve derinlemesine işlenmesi üzerine çalışma. Gıda Endüstrisi Teknolojisi . 2000; 21 (4):76–78. [ Google Akademik ]
          7. Li JP Diş macununda zencefil özü uygulaması. Diş Macunu Sanayi . 2008;(2):10–11. [ Google Akademik ]
          8. Peng ZY, Huang W., Guan YF ve diğerleri. Zencefilli sağlık jölesinin gelişimi. Gıda ve Fermantasyon Teknolojisi . 2009; 45 (4):74–76. [ Google Akademik ]
          9. Dong WM, Tang QY, Yuan W. Zencefilli kahverengi şekerli İçecek işleme teknolojisi üzerine çalışma. Modern Gıda Teknolojisi . 2007; 23 (2):57–58. [ Google Akademik ]
          10. Zhan B., Wang FZ Ginger Beverage serisi ürünlerin işleme teknolojisi. Tarımsal İşleme . 2013; 1 :s. 77. [ Google Akademik ]
          11. Wohlmuth H., Smith MK, Brooks LO, Myers SP, Leach DN Avustralya'da yetişen zencefilin ( Zingiber officinale Roscoe ) diploid ve tetraploid klonlarının uçucu yağ bileşimi. Tarım ve Gıda Kimyası Dergisi . 2006; 54 (4):1414–1419. doi: 10.1021/jf0521799. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          12. He WS, Yan YX, Guo BJ Zencefilin kimyasal bileşenleri ve biyoaktivitesi üzerine çalışmanın genel durumu. Çin Bitkisel Tıbbı . 2001; 24 (5):376–379. [ Google Akademik ]
          13. Jolad SD, Lantz RC, Chen GJ, Bates RB, Timmermann BN Ticari olarak işlenmiş kuru zencefil ( Zingiber officinale ): LPS ile uyarılmış PGE 2 üretimi üzerindeki bileşim ve etkiler . fitokimya _ 2005; 66 (13):1614–1635. doi: 10.1016/j.phytochem.2005.05.007. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          14. Langner E., Greifenberg S., Gruenwald J. Ginger: tarihçe ve kullanım. Terapideki Gelişmeler . 1998; 15 :25–44. [ PubMed ] [ Google Akademik ]
          15. Tan JN GC-MS Farklı üretim alanlarında zencefilden elde edilen uçucu yağların kimyasal bileşenleri üzerine çalışma. Asya-Pasifik Geleneksel Tıp . 2011; 7 (4):23–25. [ Google Akademik ]
          16. Zhang H., Yan JC, Zhanget HG ve ark. Uçucu yağın zencefilden ekstraksiyonu ve kimyasal bileşenlerinin gaz kromatografisi-kütle spektrometresi ile analizi. Analitik Kimya . 1996; 24 (3):348–352. [ Google Akademik ]
          17. Pang X., Cao J., Wang D., Qiu J., Kong F. Zencefil ( Zingiber officinale Roscoe ) uçucularının tanımlanması ve GC-olfaktometri ile aroma aktif bileşenlerin lokalizasyonu. Tarım ve Gıda Kimyası Dergisi . 2017; 65 (20):4140–4145. doi: 10.1021/acs.jafc.7b00559. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          18. Govindarajan VS, Connell DW Ginger—kimya, teknoloji ve kalite değerlendirmesi: Bölüm 1. Gıda Bilimi ve Beslenmede CRC Eleştirel İncelemeleri . 1983; 17 (1):1–96. doi: 10.1080/10408398209527343. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          19. Lin ZK, Hua YF Sichuan'daki zencefil esansiyel yağının kimyasal bileşenleri üzerine çalışma. Organik Kimya . 1987; 6 :444–448. [ Google Akademik ]
          20. Li JP, Wang YS, Ma H., ve diğ. Kurutulmuş zencefil ve zencefilin ana kimyasal bileşenleri üzerine karşılaştırmalı bir çalışma. Çin Çin Tıbbı Dergisi . 2001; 26 (11):748–751. [ Google Akademik ]
          21. Nishimura O. Aroma ekstresi seyreltme analizi ve modifiye edilmiş çok boyutlu gaz kromatografisi-kütle spektroskopisi kullanılarak taze zencefil Rizomlarında ( Zingiber officinale Roscoe ) karakteristik koku maddelerinin tanımlanması. Tarım ve Gıda Kimyası Dergisi . 1995; 43 (11):2941–2945. doi: 10.1021/jf00059a031. [ CrossRef ] [ Google Akademik ]
          22. Jia T., Xiao RL, Jiao H. Köksap zingiberler, Zingiber officinale Roscoe ve zencefil çişindeki uçucu bileşenlerin GC-MS ve kemometrik çözünürlükle analizi. . _ 2012; 1 (2):47–53. [ Google Akademik ]
          23. Wu JF, Zhang C., Zhang XM ve ark. Zencefil aroma maddelerinin ekstraksiyonu ve kompozisyon analizi. Meyve ve Sebzelerin Derin İşleme Alınması . 2006; 22 (3):94–99. [ Google Akademik ]
          24. Xuan WD, Bian J., Yuan B., ve diğ. Zencefilin kimyasal bileşenleri üzerine çalışma. Çin Bitkisel Tıbbı . 2008; 39 (11):1616–1619. [ Google Akademik ]
          25. Zhao Y., Tao QF, Zhang RP, et al. Zingiber officinale'den iki yeni bileşik . Çin Kimyasal Mektupları . 2007; 18 (10):1247–1249. doi: 10.1016/j.cclet.2007.08.002. [ CrossRef ] [ Google Akademik ]
          26. Kim MK, Na MS, Hong J., Jung ST Sıvı karbon ile ekstre edilmiş Kore zencefilinin ( Zingiber officinale Roscoe ) uçucu tat bileşenleri. Hanguk Nonghwa Hakhorchi . 1992; 35 (1):59–63. [ Google Akademik ]
          27. Cui QX, Dong Y. Uçucu zencefil yağının kimyasal bileşenlerinin GC-MS analizi. Journal of Liaocheng University (Natural Science Edition) 2006; 19 (2):43–45. [ Google Akademik ]
          28. Lu CJ, Ou M., Wang NS Zencefilin kimyasal bileşim analizinin özeti. Geleneksel Çin Tıbbının Yeni İlaçları ve Klinik Farmakolojisi . 2003; 14 (3):215–217. [ Google Akademik ]
          29. Luo HL Anhui, Çin: Anhui Ziraat Üniversitesi; 2010. Zencefilin etkinlik bileşenlerinin ekstraksiyonu, ayrılması ve bileşen çalışması. MS tezi. [ Google Akademik ]
          30. Xiong H. Sichuan, Çin: Xihua Üniversitesi; 2006. Zencefil ekstraktlarındaki bileşenlerin farklı ekstraksiyon yöntemleriyle karşılaştırmalı çalışması. MS tezi. [ Google Akademik ]
          31. Vernin G., Parkanyl C. Zencefilin kimyası. İçinde: Ravindran PN, Nirmal Babu K., editörler. Zencefil: Cins Zingiber . New York, NY, ABD: CRC Press; 2005. sayfa 87–180. [ CrossRef ] [ Google Akademik ]
          32. Huang XS, Yan RA, Wu JZ Zencefil fenolünün biyoaktivitesinin gözden geçirilmesi. Jinan Üniversitesi Dergisi . 2005; 26 (3):434–435. [ Google Akademik ]
          33. Katsuya E., Emi K., Yoshiteru O. Zingiber officinale rizomlarından izole edilen antifungal diarilheptenonlar, zencefilonlar A, B, C ve izogin-gerenon B'nin yapıları . fitokimya _ 1990; 29 (3):797–799. doi: 10.1016/0031-9422(90)80021-8. [ CrossRef ] [ Google Akademik ]
          34. Jolad SD, Lantz RC, Solyom AM, Chen GJ, Bates RB, Timmermann BN Organik olarak yetiştirilen taze zencefil ( Zingiber officinale ): LPS kaynaklı PGE 2 üretimi üzerindeki bileşim ve etkiler. fitokimya _ 2004; 65 (13):1937–1954. doi: 10.1016/j.phytochem.2004.06.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          35. Wang L., Fang L., Zhao HQ, ve diğ. Zencefildeki yaban turpu bileşiklerinin yüksek performanslı sıvı kromatografisi-elektrosprey dört aşamalı kütle spektrometrisi analizi. Çin Geleneksel Çin Tıbbı Dergisi . 2011; 36 (24):3467–3471. [ Google Akademik ]
          36. Connell DW, McLachlan R. Doğal keskin bileşikler: IV. Gingeroller, shogaoller, paradoller ve ilgili bileşiklerin ince tabaka ve gaz kromatografisi ile incelenmesi. Kromatografi Dergisi A. 1972; 67 (1):29–35. doi: 10.1016/s0021-9673(01)97144-4. [ CrossRef ] [ Google Akademik ]
          37. Zhang J., Chang YS, Zeng C., et al. Zencefil ekstraktındaki kimyasal bileşenler üzerinde çalışma. Anhui Tarım Bilimi . 2015; 43 (25):287–290. [ Google Akademik ]
          38. Galal AM 6-paradol ve ilgili bileşiklerin antimikrobiyal aktivitesi. Uluslararası Farmakognozi Dergisi . 1996; 34 (1):64–69. doi: 10.1076/phbi.34.1.64.13172. [ CrossRef ] [ Google Akademik ]
          39. Tan SB Gansu, Çin: Lanzhou Teknoloji Üniversitesi; 2017. Zencefil ve kesmenin suda çözünür kimyasal bileşenleri üzerine çalışma. MS tezi. [ Google Akademik ]
          40. Charles R., Garg SN, Kumar S. Zingiber officinale'nin rizomlarından yeni zencefil . fitoterapi . 2000; 71 (6):716–718. doi: 10.1016/s0367-326x(00)00215-x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          41. Masanori K., Kaoru UU, Tatsuo H., et al. Zingiberis köksapından hücre farklılaşma indükleyicileri ve antiandrojenik aktif bileşikler. Doğal İlaçlar . 2002; 56 (2):47–50. [ Google Akademik ]
          42. He X.-G., Bernart MW, Lian L.-Z., Lin L.-Z. Zencefilin keskin bileşenlerinin yüksek performanslı sıvı kromatografisi-elektrosprey kütle spektrometrik analizi. Kromatografi Dergisi A. 1998; 796 (2):327–334. doi: 10.1016/s0021-9673(97)01013-3. [ CrossRef ] [ Google Akademik ]
          43. Han YA, Song CW, Koh WS, et al. Lipopolisakarit ile uyarılan ham 264.7 hücrelerinde Zingiber officinaleroscoe bileşeni 12-dehidrogingerdionun anti-enflamatuar etkileri. Fitoterapi Araştırması . 2013; 27 (8):1200–1205. doi: 10.1002/ptr.4847. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          44. Zhao WZ, Zhang RX, Yu ZP ve ark. Zencefilin kimyasal bileşenleri ve biyoaktivitesi üzerine araştırma ilerlemesi. Gıda Endüstrisi Teknolojisi . 2016; 37 (11):383–387. [ Google Akademik ]
          45. Koh E., Kim H., Kim S., et al. Zingiber officinale'den izole edilen bileşiklerle makrofaj fonksiyonlarının modülasyonu . Planta Medica . 2009; 75 (02):148–151. doi: 10.1055/s-0028-1088347. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          46. ​​Kikuzaki H., Tsai S.-M., Nakatani N. Zingiber officinale'nin rizomlarından Gingerdiol ile ilgili bileşikler . fitokimya _ 1992; 31 (5):1783–1786. doi: 10.1016/0031-9422(92)83147-q. [ CrossRef ] [ Google Akademik ]
          47. Masada Y., Inoue T., Hashimoto K., Fujioka M., Uchino C. GC-MS tarafından zencefilin ( Zingiber officinale Roscoe ) bileşenleri üzerine çalışmalar. Yakugaku Zashi . 1974; 94 (6):735–738. doi: 10.1248/yakushi1947.94.6_735. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          48. Zhan KY Shandong, Çin: Shandong Tarım Üniversitesi; 2009. Zencefil yağının kimyasal bileşim analizi ve zencefil yaban turpu izolasyonu ve saflaştırılması üzerine çalışma. MS tezi. [ Google Akademik ]
          49. Juan J., Zhang HP, Prisinzano TE, Mitscher LA, Timmermann BN Zingerinlerin zencefil köksaplarından ( Zingiber officinale Roscoe ) bir faz kaçakçılığı yaklaşımı kullanılarak daha önce görülmemiş pürin içeren bileşiklerin tanımlanması. fitokimya _ 2011; 72 (9):935–941. doi: 10.1016/j.phytochem.2011.03.007. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          50. Purseglove JW, Brown EG, Green CL, Robbins SRJ New York, NY, ABD: Longman; 1981. Baharatlar. MS tezi. [ Google Akademik ]
          51. Li J. Henan, Çin: Henan Geleneksel Çin Tıbbı Koleji; 2007. Zencefilin işlenme prensibi. MS tezi. [ Google Akademik ]
          52. Liu D., Zhang CH, An RH, et al. Zencefilin ana biyoaktif bileşenlerinin çıkarılması ve uygulanmasına ilişkin araştırma ilerlemesi. Gıda Endüstrisi Bilimi ve Teknolojisi . 2016; 37 (20):391–393. [ Google Akademik ]
          53. Wang X. Zencefilin aktif bölgeleri ve bileşenleri üzerinde araştırma ilerlemesi. Geleneksel Çin Tıbbı Araştırması . 2009; 22 (12):53–55. [ Google Akademik ]
          54. Yang LX, Zhou CX, Huang KX ve ark. Zencefildeki difenil heptan bileşiklerinin antioksidan ve sitotoksik aktivitesi üzerine çalışma. Çin Geleneksel Çin Tıbbı Dergisi . 2009; 34 (3):319–322. [ Google Akademik ]
          55. Kikuzaki H., Kobayashi M., Nakatani N. Zingiber officinale rizomlarından Diarylheptanoids. fitokimya _ 1991; 30 (11):3647–3651. doi: 10.1016/0031-9422(91)80085-f. [ CrossRef ] [ Google Akademik ]
          56. Kikuzaki H., Nakatani N. Bazı zencefil bileşenlerinin antioksidan etkileri. Gıda Bilimi Dergisi . 1993; 58 (6):1407–1410. doi: 10.1111/j.1365-2621.1993.tb06194.x. [ CrossRef ] [ Google Akademik ]
          57. Ma JP, Jin XL, Yang L., ve diğ. Zingiber officinale'nin rizomlarından iki yeni diarilheptanoid. Çin Kimyasal Mektupları . 2004; 15 (11):1306–1308. [ Google Akademik ]
          58. Kikuzaki H., Nakatani N. Zingiber officinale rizomlarından döngüsel diarilheptanoidler. fitokimya _ 1996; 43 (1):273–277. doi: 10.1016/0031-9422(96)00214-2. [ CrossRef ] [ Google Akademik ]
          59. Luo JC, Feng YF, Ji X. Doğal doğrusal difenil heptan bileşiklerinin araştırma ilerlemesi. Çin Bitkisel Tıbbı . 2012; 39 (12):1913–1916. [ Google Akademik ]
          60. Zhang YF, Ma ZC Zencefil malzemeleri ve uygulamaları. Kimya Öğretimi . 2012; 8 :73–80. [ Google Akademik ]
          61. Li SH, Chen FZ, Liu Z., et al. Sera zencefilinde Vc, nitrat, nitrit, toplam şeker, organik asit içeriğinin tayini. Anhui Tarım Bilimi . 2006; 34 (14):3346–3347. [ Google Akademik ]
          62. Onyenekwe PC, Hashimoto S. Kurutulmuş Nijerya zencefilinin ( Zingiber officinale Roscoe ) uçucu yağının bileşimi Avrupa Gıda Araştırması ve Teknolojisi . 1999; 209 (6):407–410. doi: 10.1007/s002170050517. [ CrossRef ] [ Google Akademik ]
          63. Zhang WM, Jiang HF, Zhang J. Zencefilin farklı aromatik kısımlarının gaz kromatografik parmak izleri üzerinde çalışma. Çin Yabani Bitki Kaynakları . 2003; 22 (5):53–55. doi: 10.1021/om030291v. [ CrossRef ] [ Google Akademik ]
          64. Ulusal Farmakope Komisyonu. Çin Halk Cumhuriyeti Farmakopesi (Bölüm I) Pekin, Çin: China Medical Science and Technology Press; 2015. [ Google Akademik ]
          65. Liao XF, Ying YY, Guo WY ve ark. Qianwei zencefilinin özelliklerinin analizi ve ana bileşenlerinin belirlenmesi. Çin Geleneksel Çin Tıbbı Dergisi . 2019; 34 (6):2680–2683. [ Google Akademik ]
          66. Xuan WD, Bian J., Wang CW ve ark. Zencefilde 6-gingerolün ekstraksiyon yöntemlerinin ve kalite kontrolünün karşılaştırılması. Çin Halk Kurtuluş Ordusu Eczacılık Dergisi . 2008; 24 (4):329–331. [ Google Akademik ]
          67. Mao Q.-Q., Xu X.-Y., Cao S.-Y., et al. Zencefil ( Zingiber officinale Roscoe ) Gıdalarının Biyoaktif Bileşikleri ve Biyoaktiviteleri . 2019; 8 (6):s. 185. doi: 10.3390/foods8060185. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          68. Lai Y.-S., Lee W.-C., Lin Y.-E., et al. Zencefil esansiyel yağı, yüksek yağlı diyete bağlı alkolsüz yağlı karaciğer hastalığında hepatik hasarı ve lipid birikimini iyileştirir. Tarım ve Gıda Kimyası Dergisi . 2016; 64 (10):2062–2071. doi: 10.1021/acs.jafc.5b06159. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          69. Masuda Y., Ikuzaki H., Hisamoto M., Nakatani N. Zencefilden gelen gingerol ile ilgili bileşiklerin antioksidan özellikleri. Biyofaktörler _ 2004; 21 (1–4):293–296. doi: 10.1002/biof.552210157. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          70. Liu N., Huo GC, Zhang L. Hiperlipidemili sıçanlarda zencefilin lipid peroksidasyonu üzerindeki etkileri. Sağlık Araştırması . 2003; 32 (1):22–23. [ PubMed ] [ Google Akademik ]
          71. Zhang XH, Liu HX Gingerol araştırma ilerlemesi. Guangxi Normal Üniversitesi Dergisi . 2009; 26 (1):110–113. [ Google Akademik ]
          72. Kim E.-C., Min J.-K., Kim T.-Y., et al. [6]-Zencefilin keskin bir bileşeni olan Gingerol, in vitro ve in vivo olarak anjiyogenezi inhibe eder. Biyokimyasal ve Biyofiziksel Araştırma İletişimi . 2005; 335 (2):300–308. doi: 10.1016/j.bbrc.2005.07.076. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          73. Lantz RC, Chen GJ, Sarihan M., Sólyom AM, Jolad SD, Timmermann BN Zencefil köksapından ekstraktların bitki örtüsü üzerindeki etkisi. Bitki ilacı 2007; 14 (2-3):123–128. doi: 10.1016/j.phymed.2006.03.003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          74. Qian HM, Wang M., Su ZX Zencefil özünün anti-tümör etkileri üzerine ön deneysel çalışma. Jiangsu İlaç ve Klinik Araştırma . 1999; 7 (3):14–16. [ Google Akademik ]
          75. Xu J. Zencefilin anti-tümör etkilerine ilişkin araştırma ilerlemesi. Milliyetler için Youjiang Tıp Fakültesi Dergisi . 2015; 37 (3):496–497. [ Google Akademik ]
          76. Liu X., Zhang HW, Fu RQ ve ark. Anti-tümör etkileri ve zencefildeki gingerolün aktif bileşenlerinin mekanizması. 3. Askeri Tıp Üniversitesi Dergisi . 2017; 39 (9):884–890. [ Google Akademik ]
          77. Lu CJ, Ou M., Wang NS Zencefilin kardiyovasküler ve serebrovasküler sistem üzerindeki farmakolojik etkileri. Çin Tıbbı Yeni İlaç ve Klinik Farmakoloji . 2003; 14 (5):356–357. [ Google Akademik ]
          78. Suekawa M., Ishige A., Yuasa K., Sudo K., Aburada M., Hosoya E. Zencefil üzerinde farmakolojik çalışmalar. I. Keskin bileşenlerin, (6)-gingerol ve (6)-shogaol'ün farmakolojik etkileri. Journal of Pharmacobio-Dynamics . 1984; 7 (11):836–848. doi: 10.1248/bpb1978.7.836. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          79. Wu JA, Wang XY, Wang KL ve ark. Zencefilin besin değeri ve farmakolojik etkisi üzerine araştırma ilerlemesi. Gıda Sanayi . 2019; 40 (2):237–239. [ Google Akademik ]

          Yorum yap


          • #6
            Antidislipidemik, antihipertansif ve endotel modüle edici aktivitelerinin karşılaştırılması için iki poliherbal formülasyon (ZPTO ve ZTO) üzerine çalışmalar

            Nauman Aziz , 1, 2 Malik Hassan Mehmood , 2 ve Anwarul-Hassan Gilani 2, 3
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            1 Eczacılık Anabilim Dalı, Eczacılık Fakültesi, Karaçi Üniversitesi, Karaçi, Pakistan
            2 Doğal Ürün Araştırma Bölümü, Biyolojik ve Biyomedikal Bilimler Bölümü, Aga Khan Üniversitesi Tıp Fakültesi, Karaçi 74800, Pakistan
            3 Eczacılık Bölümü, Sağlık Bilimleri Fakültesi, Mekelle Üniversitesi, Mekelle Etiyopya
            Sorumlu yazar.
            Nauman Aziz: moc.liamg@irtahknamuan ; Malik Hassan Mehmood: ude.uka@doomhem.nassah ; Anwarul-Hassan Gilani: moc.oohay@inalighrawna
            Git: Soyut

            Arka plan


            Kardiyovasküler bozukluklar (KVH'ler) dünya çapında hastalık yükünün önde gelen nedenidir. CVD'lerde kullanılan mevcut sentetik ilaçlar dışında, POL-10 (10 bitki içeren) dahil olmak üzere hayvan çalışmalarında etkili olduğu gösterilen ancak POL-10'un yan etkisi olarak kemirgenlerde taşikardiye neden olduğu bulunan birçok bitkisel formülasyon vardır. Bu çalışma, CVD'lerde daha iyi etkinlik ve/veya güvenlik profili için POL-10'un bileşimini değiştirmek üzere tasarlanmıştır.

            Yöntemler
            Z: Zingiber officinalis , P: Piper nigrum, T: Terminalia belerica ve O: Orchis mascula içeren iki bitkisel formülasyonun (ZPTO ve ZTO) antidislipidemik, antihipertansif ve endotel modülatör özelliklerini değerlendirmek için, tyloxapol ve yüksek yağ içeren farklı hayvan modelleri diyete bağlı dislipidemi ve spontan hipertansif sıçanlar (SHR) kullanıldı. Endotel fonksiyonu üzerindeki etki, PowerLab veri toplama sistemi ile birleştirilmiş izole doku banyosu kurulumu kullanılarak incelenmiştir. Antioksidan aktivite, DPPH radikal yakalama deneyi kullanılarak gerçekleştirilmiştir.

            Sonuçlar
            Tyloxapol kaynaklı hiperlipidemik sıçanlarda POL-10 bileşenlerinin ön taramasına dayanarak, dört aktif bileşen içeren ZPTO ve ZTO; Daha ileri çalışmalar ve karşılaştırma için Z, P, T ve O tanımlandı. Tyloxapol ile indüklenen hiperlipidemik sıçanlarda, hem ZPTO hem de ZTO, serum trigliserit (TG) ve toplam kolesterolde (TC) önemli azalmaya neden oldu. Yüksek yağlı diyetle beslenen sıçanlarda ZPTO, TC'yi, düşük yoğunluklu lipoproteinler kolesterolü (LDL-C) ve aterojenik indeksi (AI) düşürdü. ZTO ayrıca, AI'yı, vücut ağırlığını azaltmada ve daha da önemlisi yüksek yoğunluklu lipoproteinleri yükseltmede daha etkili olmanın ek yararları ile ZPTO'nunkine benzer etkiler gösterdi. SHR'de her iki formülasyon da sistolik kan basıncını, AI ve TG düzeylerini önemli ölçüde azalttı; ZTO, kardiyak uyarıcı etkiden yoksunken endotel disfonksiyonunu tersine çevirmede daha güçlüydü. Ek olarak, ZTO ayrıca LDL-C'yi azalttı ve SHR'de glikoz seviyelerini iyileştirdi. DPPH radikal yakalama aktivite testinde de ZTO, ZPTO'dan daha güçlüydü.

            Çözüm
            Değiştirilmiş formülasyon olan ZTO, yalnızca kardiyovasküler anormallikleri düzeltmede ZPTO veya POL-10'dan daha etkili bulunmadı, aynı zamanda ZPTO'da Piper nigrum varlığından dolayı gözlemlenebilen taşikardiyak yan etkiden arınmış oldu.

            Anahtar Kelimeler: Poliherbal formülasyon, Endotel disfonksiyonu, Antihipertansif antidislipidemik, Antioksidan
            Git: Arka plan


            Kardiyovasküler hastalıklar (CVD'ler) insanlığı etkileyen önemli bir sağlık yükü taşımaktadır [ 1 ]. Hipertansiyon, dislipidemi, endotel disfonksiyonu ve oksidatif stres, KVH'lerde yer alan başlıca patolojilerdir ve büyük bir risk oluştururlar [ 2 ]. Bu patolojileri kontrol altına almak için kullanılan sentetik ilaçların yanı sıra, dünya çapında çeşitli kültürlerde bir dizi geleneksel bitkisel ilaç kullanılmaktadır. 10 şifalı bitki (POL-10) içeren poliherbal bir formülasyon, Pakistan halk tıbbında kalp rahatsızlıkları için kullanılmıştır. Hayvan çalışmalarında, POL-10'un SHR'de antihipertansif, endotel modüle edici ve antidislipidemik aktivitelere sahip olduğu bildirilmiştir [ 3]. Bununla birlikte, KVH'lerde zararlı yan etkiler olarak kabul edilen, tedavi edilen hayvanlarda kalp atış hızında ve vücut ağırlığında artışa neden olmuştur. Bu çalışma, CVD'lerde kullanımı için daha iyi etkinlik ve/veya güvenlik profili için POL-10'un bileşimini değiştirmek üzere tasarlanmıştır. Tyloxapol kaynaklı hiperlipidemik sıçanlarda POL-10 bileşenlerinin ön taramasına dayanarak, dört aktif bileşen içeren iki formülasyon; Z: Zingiber officinalis (Zencefil), P: Piper nigrum (Karabiber), T: Terminalia belerica (Balela) ve O: Orchis mascula(Saalab misri), ZPTO olarak etiketlendi ve ZTO olarak etiketlenen üç bileşen (P hariç), yüksek yağlı diyetle indüklenen dislipidemi, spontan hipertansif sıçanlarda yüksek tansiyon (SHR), vücut ağırlığı, sıçanların izole vasküler preparasyonunda endotel fonksiyonu ve DPPH radikal süpürme deneyi kullanılarak antioksidan etki.

            Bu seçilmiş formülasyonların, T. belerica [ 4 , 5 ]; Z. officianlis ve P. nigrum'un [ 6 ] diğer şifalı bitkilerle kombinasyon halinde kullanıldıklarında sinerjistik aktivitelere sahip oldukları bildirilmiştir. Güney Asya'daki kültürel bir inanca göre, bileşik müstahzarlar tek bir bitkiden daha etkili ve daha güvenli olarak kabul edilmektedir [ 7 ] . ) temel bileşendir [ 4 ].

            Seçilen poliherbal formülasyonların bireysel bileşenleri hakkında mevcut veriler; Z. officinalis [ 8 , 9 ], P. nigrum [ 10 , 11 ] , T. belerica [ 5 , 12 ] ve O. mascula [ 13 ] spesifik olmayan deneysel modeller kullanarak kardiyovasküler anormalliklerdeki etkinliklerine dair dolaylı bir kanıt sağlar. Ek olarak, Z. officinalis [ 14 , 15 ] ve O. mascula [ 16 ] da bir dizi in vitro kullanılarak laboratuvarımızda bireysel olarak çalışılmıştır.Kardiyovasküler bozukluklardaki etkinlikleri için tahliller ve hayvan modelleri. Bununla birlikte, tek bir bileşenin daha uzun süre yüksek dozda tek başına alınması aksi takdirde zararlı olabileceğinden, seçilmiş şifalı bitki kombinasyonlarının CVD'lerde sinerjistik ve/veya yan etkileri nötralize etme potansiyeline sahip etkinliğini gösteren kapsamlı bir çalışma neredeyse yoktur [ 17 ]. ].

            Git: Yöntemler
            Bitki materyali ve ekstraksiyon
            Tüm malzemeler ( Zingiber officinalis (Z), Piper nigrum (P), Terminalia belerica (T), Orchis mascula(O) ZPTO, Pakistan, Karaçi'deki yerel bir bitki deposundan satın alındı. Numuneler, Karaçi'deki Hamdard Üniversitesi'nde bir botanikçi olan Bay M. Afzal Rizvi tarafından doğrulandı. Bireysel numuneler, Aga Khan Üniversitesi, Karaçi, Pakistan, Biyolojik ve Biyomedikal Bilimler Departmanındaki Doğal Ürünler Araştırma Bölümü'nün herbaryumuna ZO-RZ-03-06-75, PN-FT- olarak atanan ilgili kupon numaralarıyla bırakıldı. 03-06-72, TB-FT-03-06-74 ve OM-RT-03-06-70. ZPTO'nun bileşenleri ayrı ayrı ince toz haline getirildi ve son olarak eşit oranlarda (her biri 50 g) birlikte karıştırıldı. Kronik çalışma için ZPTO ve toz formdaki P'nin ZPTO'dan çıkarılmasıyla hazırlanan hafif modifiye edilmiş formu ZTO diyete karıştırıldı. Serbest radikal yakalama ve akut toksisite testleri için ZPTO ve ZTO, sulu metanol (30: 70) ara sıra sallayarak üç gün boyunca. Bir tülbent bezinden ve ardından Whatman kalitatif dereceli No.1 filtre kağıdından [18 ]. Bu prosedür üç kez tekrarlandı ve süzüntüler birleştirildi ve yaklaşık %10 (ağırlık/ağırlık) verecek şekilde kalın koyu kahverengi ham özü elde etmek için döner buharlaştırıcıda buharlaştırıldı. İlaçlar ve standartlar


            Asetilkolin klorür, kolesterol, kolik asit, fenilefrin, potasyum klorür ve tiloksapol (triton WR-1339), Sigma Chemical Company, St. Louis, MO, ABD'den alınmıştır. Serum analizi için Randox teşhis kitleri Randox Laboratories Ltd., Co.'dan alınmıştır. .Antrim, Birleşik Krallık. Kullanılan tüm kimyasallar en yüksek saflıktaydı. Fizyolojik tuz çözeltileri deney günü distile suda taze olarak hazırlanırken, tüm ilaçların ve ekstraktların stok çözeltileri distile su/salin içinde yapılarak -20°C'de saklandı ve dilüsyonlar deney günü taze olarak hazırlandı. . Hayvanlar


            Kendiliğinden Hipertansif Sıçanlar (Suş: SHR/NCrlBR; hipertansif, stroksuz) ve normotansif kontrolleri Wistar Kyoto Sıçanları (WKY), 4 haftalıkken Avustralya Hayvan Kaynakları Merkezi'nden ithal edildi. Sprague-Dawley (SD) sıçanları (170–200 g) ve Balb/c fareleri (20–25 g) gibi diğer hayvanlar yerel olarak tedarik edilmiş ve Aga Khan Üniversitesi'nin hayvan evinde barındırılmıştır. Hayvanlar, gerektiğinde talaşlı (her 48 saatte bir yenilenen) kendi kafeslerinde tutuldu, 23–25°C'de tutuldu ve yiyecek ve suya serbest erişimleri sağlandı. Yapılan deneyler Laboratuvar Hayvanları Kaynakları Enstitüsü, Yaşam Bilimleri Komisyonu, Ulusal Araştırma Konseyi kararlarına uygun yapılmıştır [ 19] ve bu çalışma, Karaçi Üniversitesi, Karaçi, Pakistan İleri Araştırmalar ve Araştırma Kurulu tarafından onaylanan Dr. Nauman Aziz'in doktora önerisinin bir parçasıydı.

            Diyetlerin hazırlanması
            Diyetler (AD) şu şekilde hazırlandı;

            A. Normal diyet: Normal diyet, daha önce Harkness [ 20 ] tarafından Karaçi'deki Aga Khan Üniversitesi'nin (AKU) hayvan evinde açıklandığı gibi hazırlandı . Un (5 Kg), çokar (5 Kg), pekmez (150 g), tuz (75 g), nutrivet L (33 g), potasyum meta bisülfat (15 g), sıvı yağ (500 g), balık unu (2.25 Kg) ve süt tozu (2 Kg) olmak üzere toplam yaklaşık 13 Kg gıda maddesi.

            B. Tedavi diyetleri: Diyet A'ya karıştırılmış ZPTO veya ZTO (%3 w/w).

            C. Yüksek yağ/Aterojenik diyet: Kolesterol (%2 w/w), kolik asit (%0.5 w/w) ve tereyağı (%5 w/w) A'ya [ 21 ] eklenmiştir .

            D. Tedavi diyeti: Diyet C'ye karıştırılmış ZPTO veya ZTO (%3 w/w).

            Yoğurma öncesinde katkı maddelerinin ve ZPTO veya ZTO tozunun rasyonun kuru bileşenlerinde üniform olarak karışmasını sağlamak için tüm önlemler alınmıştır.

            Farmakolojik parametreler
            Tyloxapol kaynaklı hiperlipidemi üzerine çalışma
            Tyloxapol ile indüklenen hiperlipideminin [ 22 ] daha önce tarif edilen bir hayvan modeli hafif modifikasyonlarla takip edildi. 160-180 g ağırlığındaki erkek Sprague-Dawley (SD) sıçanlar rastgele 14 gruba ayrıldı (her biri 6'şar adet), grup 1 ve 2'ye diyet A (normal diyet), grup 3 ve 4'e diyet B (normal diyet ile) verildi. ZPTO veya ZTO), 5-8. gruplardaki hayvanlara Z, P, T veya O ile normal diyet verilirken, kalan altı gruba kalan 6 bileşen uygulandı; Aristolochia rotunda, Cinnamomum officinalis , Emblica officinalis , Matricaria papatya , Piper longum ve Plumbago zeylanica, orijinal poliherbal formülasyon POL-10. 10 günlük tedaviden sonra, tüm hayvanlar 7 saat aç bırakıldı ve grup 1 salin (10 ml/kg; ip), grup 2-14 ise tiloksapol (500 mg/kg; ip) aldı. Ertesi gün, hayvanlara dietil eter ile anestezi uygulandı ve " Lipit profili ve glikozun tahmini " bölümünde açıklandığı gibi serum toplam kolesterol (TC) ve trigliseritlerin (TG) analizi için kan alındı .

            Yüksek yağlı diyetle beslenen sıçanlarda lipit profili, diyet tüketimi ve vücut ağırlığı üzerine çalışma
            Hem ZPTO hem de ZTO, Berroughui ve ark. [ 23 ] pilot çalışmalardan sonra küçük değişikliklerle. Yetişkin SD sıçanlar (12-14 haftalık, 140-160 g ağırlığında) rastgele 4 gruba ayrıldı (her grupta 7-10 hayvan), grup 1'e diyet A (normal kontrol olarak sunuldu) ve diyet C (aterojenik) verildi. kontrol), grup 2'ye, grup 3 ve 4'e 8 hafta diyet D (tedavi) verildi. Tüm hayvanların suya ve diyete ücretsiz erişimi vardı. Diyet tüketimi günlük olarak izlendi ve vücut ağırlığındaki değişim 8 hafta boyunca haftalık olarak ölçüldü [ 23]. Tedavinin 8. haftasının sonunda, hayvanlar kan alımından 16 saat önce aç bırakıldı ve örnekler " Lipid profili ve glikozun tahmini " bölümünde ayrıntılı olarak açıklandığı gibi serum lipidleri ve glikoz için analiz edildi.

            SHR'de kan basıncı, kalp hızı ve lipid profili üzerine çalışma
            20-24 haftalık Erkek Kendiliğinden Hipertansif Sıçanlar (SHR), rastgele 3 gruba ayrıldı (her birinde n = 7-8). Grup 1'e diyet A (normal diyet) ve grup 2 ve 3'e 8 hafta boyunca diyet B (ZPTO veya ZTO ile normal diyet) verildi. Wistar Kyoto Sıçanları (WKY), normotansif kontrol olarak görev yaptı ve aynı süre boyunca diyet A verildi. Sistolik kan basıncı, tedavinin başlangıcından önce ve tedavinin 8 haftası boyunca, çalışan bir bilgisayara bağlı PowerLab 4/25 veri toplama sistemine bağlı bir tail-cuff pletismografı (Model 92, IITC Inc., Woodland Hills, ABD) kullanılarak tahmin edildi. Chart 5.3 yazılımı (ADInstruments, Sidney, Avustralya). Kalp atış hızı, Chart yazılımının döngüsel ölçümler seçeneği kullanılarak çevrimiçi olarak hesaplanmıştır. Deneye başlamadan önce sıçanlar kan basıncı ölçümü açısından on gün boyunca günlük olarak eğitildiler. Kan basıncı ölçüm prosedürü ile alıştırmadan sonra, bilinçli her hayvanın sistolik kan basıncının 6-8 okuması kaydedildi ve maksimum ve minimum atıldıktan sonra medyan değerler hesaplandı. Sistolik kan basıncı, tedavinin 0, 4 ve 8. haftalarında ölçüldü. Açıklanan non-invaziv kan basıncı ölçümünün doğrudan kan basıncı ile %96 korelasyona sahip olduğu rapor edilmiştir [24 ]. Tüm hayvanlar, çalışma süresi boyunca suya ve diyete ücretsiz erişime sahipti. Tedavinin 8. haftasının sonunda, hayvanlar kan alımından 16 saat önce aç bırakıldı ve numuneler “ Lipit profili ve glukozun tahmini ” bölümünde bahsedildiği gibi serum lipitleri ve glukoz için analiz edildi.

            SHR'nin sıçan aortunda vasküler reaktivite üzerine çalışma
            Tedavinin sonunda, SHR ve WKY 16 saat aç bırakıldı, dietil eter ile inhalasyon yoluyla anestezi uygulandı, kardiyak ponksiyon yoluyla kan alındı ​​​​ve lipit profili ve glikoz için serum analiz edildi. Torasik aort izole edildi ve endotelyal reaktivite açısından incelendi. İnen torasik aorta hemen Kreb tamponuna (bileşim mmol/L cinsinden: NaCl 118.4, KCl 4.7, CaCl2 2.5 , KH2P04 1.2 , MgS04 1.2 , NaHCO3 25 ve glukoz 11 cinsinden) aktarıldı, adventisyal dokudan temizlendi ve enine olarak halka segmentleri (3 mm uzunluğunda) halinde kesildi. Her halka, karbojen (%95 O2 ve %5 C02 ) ile köpürtülmüş Kreb tamponu (37°C) ile doldurulmuş bir doku banyosuna yerleştirildi.) ve izometrik gerilimin ölçümü için bir Trans-bridge'e (model TBM4M, World Precision Instruments, Hertfordshire, BK) ve PowerLab veri toplama sistemine bağlı bir kuvvet dönüştürücüye (model FORT100) bağlıdır. Aortik halkaların, her 15 dakikada bir tampon değişiklikleriyle 2 g'lık bir dinlenme geriliminde en az 60 dakika dengelenmesine izin verildi. İzometrik gerilim stabilize olduğunda, asetilkolinin (ACh) 1 x 10 -9 -10 -5 mol/L inhibitör konsantrasyon-yanıt eğrileri (CRC'ler), maksimum altı fenilefrin dozu (1 x 10 -6 mol/ ) ile indüklenen kasılmalara karşı oluşturuldu. L; PE) [ 25 ].

            Lipit profili ve glikoz tahmini
            Kan, gece boyunca aç bırakılan anestezi uygulanmış sıçanlardan kardiyak ponksiyon yoluyla vacuutainer içinde toplandı. 3000 devirde 10 dakika santrifüj edildikten sonra serum ayrıldı. Serum lipitleri ve glukoz, ticari olarak temin edilebilen Randox Laboratories kitleri kullanılarak enzimatik olarak test edildi, Serum toplam kolesterolü (TC), yüksek yoğunluklu lipoproteinler (HDL-C), trigliserid (TG) ve glukoz, imalatçı tarafından açıklanan yöntemlerle belirlendi (Randox Laboratories Ltd). ., Co. Antrim, BK). Düşük yoğunluklu lipoproteinler kolesterol (LDL-C), şu formül kullanılarak dolaylı olarak tahmin edilmiştir: LDL = Toplam Kolesterol – HDL – TG/5). Aterojenik indeks, aşağıdaki formül kullanılarak hesaplandı: Aterojenik indeks = TC-HDL/HDL) [ 26 ].

            Serbest radikal temizleme aktivitesi
            Misbah ve ark.'nın daha önceki bir yönteminde küçük değişikliklerle. [ 27 ] çalışmasında metanol içinde 0.1 mM 1,1-difenil-2-pikril-hidrazil (DPPH) radikali çözeltisi hazırlandı ve bu çözeltinin 1 ml'si metanol içindeki 3 ml ekstrakt çözeltisine farklı konsantrasyonlarda ilave edildi ve ardından absorbans 30 dakika sonra 517 nm'de ölçülmüştür. DPPH solüsyonunun absorbansındaki azalma, DPPH radikal yakalama aktivitesinde bir artışa işaret eder. DPPH radikal yakalama aktivitesi yüzdesi aşağıdaki denklemle hesaplandı:
            %DPPHradikalsüpürme= ( 1 -KontrolDevamsızlık - ÖrnekAbsorbansKontrolAbsorbans)× 100


            DPPH solüsyonu kontrol olarak alındı. CRC'ler, % 95 güven aralığı ile birlikte medyan etkili konsantrasyonların (EC50) hesaplanması için serbest radikal süpürme aktivitesinin yüzdesine karşı μg/ml cinsinden ekstrakt konsantrasyonları olarak çizildi .

            Akut toksisite testi
            BALB/c fareleri, her biri 5'erli 4 gruba ayrıldı ve 10 ml/kg'lık bir hacimde artan dozlarda ZPTO ve ZTO ham özütleri (1, 2 ve 3 g/kg) verildi. Farelerden oluşan bir negatif kontrol grubuna salin (10 ml/kg, po) uygulandı. Hayvanlar, yiyecek ve suya serbest erişime sahipti ve ölüm değerlendirmesi için 24 saat gözlem altında tutuldu [ 28 ].

            istatistiksel analiz
            Ortalama ± SEM ve EC50 değerleri olarak ifade edilen tüm veriler, % 95 güven aralıkları (CI) ile geometrik ortalama olarak sunulur. Eşleştirilmemiş iki grubun ortalamaları arasındaki karşılaştırma için Student t-testi, kontrol grubu ile ikiden fazla grubun ortalamalarındaki farklılıkların karşılaştırılmasında ise One-way Varyans Analizi (One-way ANOVA) ve ardından Dunnett çoklu karşılaştırma testi kullanıldı. Konsantrasyon-yanıt eğrileri (CRC'ler), doğrusal olmayan regresyon analizi kullanılarak analiz edildi. İki yönlü ANOVA ve ardından Bonferroni'nin test sonrası düzeltmesi, ilgili kontrol ile CRC'lerin çoklu karşılaştırması için kullanıldı. 0,05'ten küçük P değerleri (p < 0,05) istatistiksel olarak anlamlı kabul edildi. Tüm grafikler, hesaplamalar ve istatistiksel analizler, Windows için GraphPad Prism yazılımı sürüm 4.00 (GraphPad Software, San Diego California ABD, http://www.graphpad.com ) kullanılarak yapıldı.

            Git: Sonuçlar
            ZPTO, ZTO ve bileşenlerinin tiloksapol kaynaklı hiperlipidemi üzerindeki etkileri
            Daha iyi etkililik ve/veya güvenlik profiline sahip yeni bir formülasyon oluşturma girişiminde, daha önce üzerinde çalışılan bir poliherbal formülasyon [ 3 ] olan POL-10'un ayrı bileşenleri bu modelde tarandı. Tyloxapol'ün sıçanlara uygulanması, serum trigliseritlerinde (TG) 6295 ± 499,30'a karşı 71,56 ± 2,69 mg/dl'ye (p < 0,001; n = 8-10) ve toplam kolesterolün (TC) 531,6 ± 30,01'e karşı 89,51'e yükselmesine neden oldu Tedavi edilmemiş hayvanlarla karşılaştırıldığında ± 2,31 mg/dl (p < 0,001; n = 8-10). POL-10'un 10 bileşeninden sadece 4'ü serum TG ve TC seviyeleri üzerinde pozitif etki gösterirken, geri kalan 6 bileşen bu modelde inaktif bulunmuştur (veriler gösterilmemiştir). Hayvanların yeni tasarlanan ZPTO formülasyonunun ayrı ayrı bitkileri ile ön tedavisi 3075 ± 119 mg/dL (Z. officinalis ), 3536 ± 897,2 mg/dL ( P. nigrum ), 3588 ± 150,7 mg/dL ( T. belerica ) ve 2823 ± 114 mg/dL ( O. mascula ) ile karşılaştırıldığında 6295 ± 499,30 mg/dL ( tyloxapol) -yönetilen kontrol). Benzer şekilde, ZPTO (2336 ± 574 mg/dL) ve ZTO (2499 ± 633,6 mg/dL) formülasyonlarının her ikisi de tiloksapol uygulanan kontrole kıyasla serum TG seviyelerinde belirgin bir azalma (p < 0,01) üretti. Hem ZPTO hem de ZTO , tek tek bileşenlerle karşılaştırıldığında TG'yi azaltmada daha etkili (1/ 4'üncü ve 1 / 3'üncü dozlarda) bulundu.

            Tyloxapol kaynaklı hiperkolesterolemide, hayvanlara Z. officinalis (295.4 ± 99.92 mg/dL), O. mascula (277.6 ± 84.74 mg/dL), P. nigrum (373 ± 66.09 mg/dL), ZPTO (319.3) ile ön tedavi ± 61,29 mg/dL) ve ZTO (341,9 ± 70,91 mg/dL), tiloksapol kaynaklı TC düzeylerindeki artışı önemli ölçüde (p < 0,01) önledi. Ancak T. belerica'nın (466.6 ± 23.69 mg/dL) TC seviyeleri üzerinde herhangi bir etkisinin olmadığı (p > 0.05) bulundu. Hem ZPTO hem de ZTO, tek tek bileşenlerine kıyasla TC seviyelerinde benzer derecede azalma gösterdi, ancak dozların 1/ 4'ünde ve 1/3'ünde .

            ZPTO ve ZTO'nun yüksek yağlı diyetle beslenen sıçanlarda lipid profili, diyet tüketimi ve vücut ağırlığı üzerindeki etkileri
            8 hafta süreyle beslenen aterojenik diyet, normal diyetle beslenen hayvanlardan elde edilen verilere göre SD sıçanların vücut ağırlığında artışla birlikte TC, LDL-C, aterojenik indeks ve glukoz düzeylerinde önemli bir artışa neden olmuştur. Aterojenik diyetle beslenen sıçanlara %3 ZPTO ve %3 ZTO takviyesi, TC, LDL-C, aterojenik indeks ve günlük diyet tüketiminde önemli bir azalmaya (p < 0.001) neden oldu. Ancak ZTO ile tedavi, HDL-C'nin yükseltilmesi açısından ek faydalar sağladı. ZTO, aterojenik indeks üzerinde ZPTO'dan nispeten daha iyi (p < 0.05) etki gösterirken, ZPTO glikoz seviyeleri üzerinde daha güçlü etkiye (p < 0.5) neden oldu.

            Aterojenik diyetle beslenen obez sıçanlarda kilo alımı üzerindeki etkileri araştırıldığında, ZPTO'nun hiçbir etkisi olmadı, ancak ZTO ile tedavi edilen hayvanların vücut ağırlığında belirgin bir azalma (p < 0.01) gözlendi. Hem ZPTO hem de ZTO, TG seviyeleri üzerinde herhangi bir etki göstermedi (Tablo 1). tablo 1


            Poliherbal formülasyonların (ZPTO ve ZTO) aterojenik diyetle beslenen Sprague Dawley sıçanlarında serum lipidleri ve glikoz seviyeleri üzerindeki etkileri
            Toplam Kolesterol (mg/dl)
            74,62 ± 3,9
            390,5 ± 3,09 ###
            110,3 ± 12,14***
            110,7 ± 10,24***
            HDL-K (mg/dl)
            38,54 ± 1,7
            27,82 ± 2,97
            30,91 ± 3,1
            82,6 ± 11,45***
            LDL-K (mg/dl)
            24,9 ± 2,8
            304 ± 35,7 ###
            74,5 ± 9,4***
            57,24 ± 10,8***
            Trigliseritler (mg/dl)
            59,7 ± 4,2
            65,2 ± 6,4
            71,6 ± 11,6
            49,5 ± 11,8
            Aterojenik İndeks
            0,92 ± 0,12
            16,96 ± 3,15 ###
            3,53 ± 0,813**
            0,7 ± 0,155***
            Glikoz (mg/dl)
            95,6 ± 7,2
            147,5 ± 4,8 ###
            94,18 ± 6,96***
            130,3 ± 3,15**
            Günlük diyet tüketimi (g/Kg/gün)
            186,5 ± 11,8
            161,8 ± 12,4 #
            78,9 ± 10,8***
            121,9 ± 7,1***
            Vücut ağırlığındaki değişim % 33,33 ± 1,6 56,8 ± 1,97 ### 53,2 ± 0,8 46,51 ± 1,61**
            Ayrı bir pencerede aç
            Normal Diyet (ND) uygulanan Sprague Dawley sıçanlarına (SD), Aterojenik Diyet (AD) uygulanan SD sıçanlara; Poliherbal formülasyonlar, ZTO ve ZPTO, Zingiber officinalis (Z), Terminalia belerica (T), Orchis mascula ve/veya Piper nigrum'dan (P) oluşur ; Gösterilen değerler, 7–10 belirlemenin Ortalama ± SEM'sidir.

            ND (Student t -test) ile karşılaştırıldığında # p <0,05 ve ### p <0,001.

            AD ile karşılaştırıldığında ** p <0,01 ve *** p <0,001 (Tek yönlü ANOVA ve ardından Dunnett'in çoklu karşılaştırma testi).

            ZPTO ve ZTO'nun SHR'de kan basıncı ve lipid profili üzerindeki etkileri
            SHR'nin %3 ZPTO veya %3 ZTO ile 8 hafta süreyle tedavisi, tedavi edilmemiş hipertansif kontrol ile karşılaştırıldığında sistolik kan basıncını önemli ölçüde azalttı. ZPTO ve ZTO ile tedavi, SHR'de sistolik kan basıncını önemli ölçüde (p < 0.01) düşürdü. Hayvanların ZPTO ile tedavisi de SHR'de kalp hızını artırırken (p < 0.001) ZTO bunu değiştirmedi (p > 0.05). ZPTO veya ZTO ile tedavi edilen hayvanların serum örneklerinde HDL-C seviyelerinde herhangi bir değişiklik fark edilmezken, sadece ZTO ile tedavi edilen hayvanların LDL-C seviyelerinde önemli bir azalma (p < 0.05) gözlendi. Her iki preparat da SHR kontrolü ile karşılaştırıldığında TG seviyelerinde (p < 0.001) ve aterojenik indekslerde (p < 0.01) önemli bir azalma sağladı. Glikoz seviyelerinde, ZPTO tedavisi herhangi bir etki yaratmazken (p > 0.05), ZTO uygulaması önemli ölçüde (p < 0.0. 2. Tablo 2


            Poliherbal formülasyonların (ZPTO ve ZTO), SHR'de kan basıncı, serum lipidleri ve glikoz seviyeleri üzerindeki etkileri
            Sistolik KB (mmHg)
            141,7 ± 2,4
            200,9 ± 10,4 ###
            174,4 ± 4,49**
            173,3 ± 5,4**
            Nabız (BPM)
            312.0 ± 22.2
            342,9 ± 6,1 #
            383 ± 18,9***
            349,1 ± 23,9
            Toplam Kolesterol (mg/dl)
            117,3 ± 5,1
            93,3 ± 8,1 #
            76,8 ± 11,2
            82,83 ± 5,3
            HDL-K (mg/dl)
            98,28 ± 5,8
            70,15 ± 7,7 ##
            66,5 ± 8,3
            71,14 ± 4,5
            LDL-K (mg/dl)
            19,1 ± 3,4
            23,13 ± 3,8
            18,4 ± 3,6
            12,3 ± 3*
            Trigliseritler (mg/dl)
            82,85 ± 3,7
            98.0 ± 4.4 #
            60,5 ± 5,3***
            64,2 ± 6,7***
            Aterojenik İndeks
            0,20 ± 0,04
            0,37 ± 0,09 ###
            0,15 ± 0,04**
            0,17 ± 0,03**
            Glikoz (mg/dl) 113,4 ± 6,1 88 ± 13,6 # 80,8 ± 7,8 130,3 ± 17,6**
            Ayrı bir pencerede aç
            Wistar Kyoto Sıçanları (WKY), Spontan Hipertansif Sıçanlar (SHR).

            Poliherbal formülasyonlar, ZTO ve ZPTO, Zingiber officinalis (Z), Terminalia belerica (T), Orchis mascula veya/veya Piper nigrum'dan (P) oluşur.

            Gösterilen değerler, 7–8 tespitin Ortalama ± SEM'sidir.

            # p <0,05; ## p <0.01; ### p <0.001, WKY'ye (Student t-testi) kıyasla.

            * p <0,05; ** p <0,01; *** SHR ile karşılaştırıldığında p <0,001 (Tek yönlü ANOVA ve ardından Dunnett'in çoklu karşılaştırma testi).

            ZPTO ve ZTO'nun SHR'nin izole edilmiş sıçan aortunda vasküler reaktivite üzerindeki etkisi
            Hayvanların 8 hafta süreyle %3 ZPTO veya %3 ZTO ile tedavisi, tedavi edilmemiş kontrollere kıyasla izole aortta PE kaynaklı kasılmaların asetilkolin (ACh) aracılı endotel bağımlı gevşemesini iyileştirdi. Farklı hayvan gruplarının aortlarındaki ACh aracılı endotel bağımlı gevşemenin karşılaştırmalı CRC'leri Şekil'de sunulmuştur. 1. ZTO ile tedavi edilen hayvanların aortik dokuları, ZPTO'ya [0,25 μM (0,10-0,29, n = 7-) kıyasla 0,06 μM (0,03-0,07, n = 7-10) EC50 değeri ile ACh uygulamasına daha fazla gevşetici yanıt üretti. 10)], ZTO'nun vasküler reaktivite üzerinde daha güçlü bir etkisi olduğunu gösterir (Şekil 1).
            Resim, çizim vb. içeren harici bir dosya. Nesne adı 1472-6882-13-371-1.jpg
            Şekil 1
            Spontan hipertansif sıçanlar (SHR) ve Wistar Kyoto sıçanları (WKY) ve %3 ZTO (A) ve ZPTO ile tedavi edilen SHR'den izole edilen aortta fenilefrin kaynaklı (PE: 1 uM) vazokonstriksiyon üzerindeki asetilkolinin vazorelaksan etkilerini gösteren doz-yanıt eğrileri (B) iki aylık süre için. Eğriler, 5-10 hayvandan alınan yanıtların ortalama ± SEM'sini temsil eder. (#p <0,05, ###p <0,001, WKY'nin SHR ile karşılaştırmasını gösterir, öğrenci t testi *p <0,05, ***p <0,001, SHR + %3 ZTO veya ZPTO'nun SHR ile karşılaştırmasını gösterir; İki yönlü ANOVA, Bonferroni son testi).

            antioksidan aktivite
            ZPTO ve ZTO'nun ham metanolik ekstraktları, DPPH serbest radikal yakalama deneyinde antioksidan aktiviteleri açısından incelenmiştir. Her iki formülasyon da EC50 değerleri (%95 CI; n = 3-6) ve R2 (korelasyon katsayısının bir karesi, 1'e yakın değeri konsantrasyon ve aktivite arasında daha iyi korelasyon gösterir ve ayrıca iyiliği olarak ifade edilir) ile önemli bir etki göstermiştir . konsantrasyon eğrisi uyumu) ​​ZPTO: 11,44 μg/mL (6,53-20,04; n = 3-6, 0,991) ve ZTO: 4,33 μg/mL (3,98-4,71; n = 3-6, 0,996) olarak. Bu etkilerin , 2,11 μg/mL (1,97-2,26; n = 3-6, 0,999) EC50 değeriyle antioksidan etki sergileyen, pozitif kontrol olarak kullanılan bütil hidroksitoluenin (BHT)kine benzer olduğu bulundu . ZTO'nun ZPTO'dan neredeyse üç kat daha güçlü olduğu açıktır.

            Akut toksisite testi
            Fareler üzerinde yapılan akut toksisite çalışmalarında, ağız başına 3 g/kg'a (po) kadar ZPTO ve ZTO, 48 saatte ölüm üretmedi. 6-8 haftalık kronik tedavi sırasında ZPTO, SHR'nin kalp hızında artışa neden olurken, ZTO bu etkiden yoksundu. Hem ZPTO hem de ZTO, normotansif sıçanlarda ve SHR'de herhangi bir ölüme veya davranış değişikliğine neden olmadı.

            Git: Tartışma
            Bir poliherbal formülasyonun (POL-10) tedavi edilen hayvanlarda kalp atış hızını ve vücut ağırlığını artıran bir yan etki gösterdiği bildirilmiştir [ 3 ]. Bu çalışmanın amacı, CVD'lerde kullanımı için bileşimi daha iyi etkinlik ve/veya güvenlik profili ile değiştirmekti. Hiperlipidemi KVH'lerin ana risk faktörüdür. Tyloxapol kaynaklı hiperlipidemi modeli, lipit düşürücü ilaçların etki mekanizmasını taramak ve araştırmak için yaygın olarak kullanılmaktadır. Bu tahlilde, POL-10'un 10 bileşeninden sadece dört Zingiber officinalis , Piper nigrum , Terminalia belerica ve Orchis mascula aktif bulundu. Bu nedenle, dört bileşenin hepsinin (ZPTO) bir kombinasyonu daha ayrıntılı olarak incelenmiştir. Ayrıca, P. nigrumayrıca SHR'de aterojenik indeks ve trigliserit düzeylerinde artış gibi bazı olumsuz etkiler de göstermiştir. İkinci bir kombinasyon olan ZTO ( P. nigrum içermeyen ), geliştirilmiş versiyon olarak çalışmaya dahil edildi.

            Normotansif SD sıçanlarda, sıçanlara 500 mg/kg dozunda tiloksapol uygulamasının, özellikle HMG Co-A aktivitesinde [ 29 ] ve plazma lipidlerinin hidrolizinden sorumlu olan lipoprotein lipazın inhibisyonu [ 30 ]. Bu hiperlipidemi modelinde, hem ZPTO hem de ZTO, ana formülasyon olan POL-10'dan daha iyi etkinlikle TG ve TC seviyelerinde önemli bir azalma gösterdi [ 3]. Benzer şekilde, TG düzeylerini düşürmede, tek tek bileşenleriyle karşılaştırıldığında daha etkiliydiler (dozun 1/4'ü ila 1/3'ü), bu formülasyonların TG düzeyleri üzerinde sinerjistik etkisine işaret ediyor. Bu sonuçlar ayrıca, yeni formülasyonların, muhtemelen lipid biyosentezinin inhibisyonunu içeren lipid düşürücü etkilere sahip olduğunu da gösterdi.

            Yüksek kolesterol ve kolik asit içeren yüksek yağ/aterojenik diyet, endotel disfonksiyonuna, ateroskleroza [ 31 ] neden olur ve Elk-1 ve p-CREB [ 32 ] gibi oksidasyona duyarlı genlerin ekspresyonunu artırarak oksidatif stresi artırır . Kolik asit içeren yüksek kolesterol diyetinin bağırsak emilimini ve sekresyonunu artırarak ve kolesterol katabolizmasını azaltarak TC, LDL-C, aterojenik indeksi arttırdığı ve HDL-C'yi düşürdüğü de bilinmektedir.]. Sıçanların ZTO veya ZPTO ile tedavi edilmesi serum TC ve LDL-C düzeylerini düşürürken TG düzeylerinde herhangi bir değişiklik gözlenmedi. ZTO, HDL-C'yi yükseltme açısından ZPTO'dan üstün bulundu. Benzer şekilde, ZTO aterojenik indeksi düşürmede daha iyi etkinlik gösterirken, ZPTO sadece glikoz seviyelerini düşürmede daha etkiliydi, bu da daha fazla araştırmaya ihtiyaç duyuyor. Yüksek yağlı diyet alımının karakteristik bir özelliği olan obeziteye yol açan kilo alımı ve diyet tüketimindeki artışın dikkate alınması [ 34], her iki formülasyon da diyet tüketimi ve kilo alımı üzerindeki etkileri açısından karşılaştırıldı. ZPTO'nun diyet tüketimini azaltmada daha etkili olduğu (P < 0.01) bulunurken, yalnızca ZTO, aterojenik diyetle obez farelerin kilo alımını azalttı ve ZPTO'da görülmeyen ek ağırlık azaltma potansiyelini gösterdi. Bu veriler, aterojenik diyetle beslenen hayvan modelinde ZTO'nun, ZPTO veya POL-10'dan [ 3 ] daha faydalı olduğunu açıkça göstermektedir. ZTO aynı zamanda aterojenik indekste azalmaya neden oldu ve koroner kalp hastalığı riskinin bireysel lipoprotein konsantrasyonundan daha iyi göstergeleri olarak kabul edilen HDL-C'yi yükseltti [ 35 ], böylece özellikle lipit düşürücü kimyasal ilaçlar HDL--'yi düzeltmede sınırlı başarıya sahip olduğunda ek fayda gösterdi. C anormalliği [ 36]. SHR modeli, belirli bir etiyoloji olmaksızın yüksek tansiyona genetik yatkınlık, hacim artışı olmadan artan toplam periferik direnç, endotelyal fonksiyon bozukluğu ve ilaç tedavilerine benzer tepkilerdeki benzerlikleri nedeniyle insan esansiyel hipertansiyonu ile eşitlemek için en yaygın kullanılan hayvan modelidir. [ 37 ]. Vasküler endotel, çeşitli vazoaktif maddelerin sentezi ve salgılanması yoluyla kan basıncının düzenlenmesinde önemli bir rol oynar. SHR'de vasküler endotel disfonksiyonuna hipertansiyon [ 38 ], hipertrigliseridemi [ 39 ] ve aşırı oksidan üretimi ve/veya antioksidan sistemlerin eksikliği [ 40 ] gibi çeşitli faktörler neden olur.]. SHR'nin ZPTO veya ZTO ile tedavisi sistolik kan basıncını, TG'yi ve aterojenik indeksi karşılaştırılabilir etkinlikle düşürürken ZTO, endotel disfonksiyonunu iyileştirmede ZPTO'dan daha etkiliydi. ZPTO'nun önemli bir sınırlaması, SHR'de kalp atış hızını artırma yeteneğiydi, ZTO ise bu zararlı etkiden yoksundu. ZPTO'dan farklı olarak, aynı zamanda LDL-C'yi azalttı ve hiperglisemiyi iyileştirdi, bu da ZTO'nun ZPTO veya POL-10'a göre daha üstün olduğunu gösterir [ 3 ].

            Yüksek yağlı diyetin sıçanlarda oksidatif strese (enzimatik ve enzimatik olmayan) neden olduğu bilinmektedir, bu durum tiobarbitürik asit reaktif maddelerinin, konjuge dienlerin yüksek seviyeleri ve önemli ölçüde azalmış süperoksit dismutaz, katalaz, glutatyon peroksidaz, glutatyon-S-transferaz ve karaciğer, kalp, böbrek, bağırsak ve aortta azaltılmış glutatyon. Antioksidanlar, bu tür hücresel hasarları etkili bir şekilde önler [ 41 ]. İlginç bir şekilde, DPPH tahlilinde test edildiğinde ZPTO ve ZTO, yüksek kolesterolün neden olduğu oksidatif stresle mücadelede ek fayda sağlayabilecek güçlü antioksidan aktivite sergiledi. SHR'de oksidatif stres, endotel hücrelerinden nitrik oksidin (NO) sentezi ve salınması için gerekli olan kalsiyum homeostazında bozulmaya neden olur [ 42]. Yeni formülasyonların antioksidan özellikleri, endotel modülasyon potansiyellerinde dolaylı olarak gözlemlendiği gibi, NO salınımını ve sentezini iyileştirmede rol oynamış olabilir. ZTO'nun antioksidan etkisinde ZPTO'dan daha etkili olduğu bulundu, bu da ZTO'nun ZPTO'ya göre bir başka üstünlüğünü düşündürüyor.

            Daha önceki bir çalışmada, POL-10'un SHR'de [ 3 ] kalp hızını artırdığı , ZPTO'da gözlendiği ancak bu çalışmada ZTO'da gözlenmediği bildirilmiştir. Piper nigrum , ZTO'yu ZPTO'dan farklı kılan ve aynı zamanda POL-10'un bir bileşeni olan tek bileşendir. P. nigrum ve onun ana alkaloid bileşeni olan piperinin monoamin oksidaz inhibe edici (MAOI) aktiviteye sahip olduğu bildirilmiştir [ 43 ]. MAOI'lerin serotonin, dopamin ve norepinefrin gibi monoaminlerin oksidatif deaminasyonunun inhibisyonuna neden olduğu ve sonunda yarı ömürlerini ve aktivitelerini arttırdığı bilinmektedir. Artan norepinefrin seviyeleri, SHR'de ZPTO'nun neden olduğu kalp hızındaki artıştan sorumlu olabilir, ancak diğer mekanizma(lar) göz ardı edilemez.

            Birlikte ele alındığında, aterojenik diyetle beslenen sıçan modelindeki önemli farklılıklar; ZTO, aterojenik indeksi ve HDL-C'yi düzeltmede ZPTO'dan daha etkiliydi. Benzer şekilde SHR modelinde, ZTO ve ZPTO'nun antihipertansif etkilerinde POL-10'dan [ 3 ] eşit derecede etkili ve nispeten daha etkili (p < 0.05) olduğu, ZTO'nun ise endotelyal vasküler reaktivite üzerindeki olumlu etkisi açısından daha etkili olduğu ve ayrıca serbest olduğu bulundu. ZPTO veya POL-10 ile karşılaştırıldığında taşikardiyak yan etkiden [ 3 ]. Ayrıca, ZTO, LDL-C ve glikoz seviyelerini düşürdü, ancak ZPTO tarafından paylaşılmadı. CVD'lerde ZTO'nun kümülatif daha iyi etkili profili, bileşenlerinin bireysel yararlı etkilerinden kaynaklanıyor olabilir; Z. officinalis [ 14 , 15 ,44 ], T. belerica [ 45 , 46 ] ve O. mascula [ 16 ].

            Tek tek şifalı bitkilere kıyasla poliherbal formülasyonların kullanımı sadece Indo-Pak alt kıtasında [ 17 ] kültürel olarak teşvik edilmekle kalmaz, aynı zamanda sinerjistik etkileşimlere sahip kanıtlarla da desteklenir, böylece tek tek bileşenlerin daha uzun süre daha düşük dozlarda alınması sağlanır, Aksi takdirde zararlı olabilecek. Ayrıca, ZPTO ve ZTO'nun seçilmiş bileşenleri , hiperkolesterolemideki etkinliği nedeniyle popüler bir bitkisel formülasyon olan, bileşenlerinden biri T. belerica içeren Trifla gibi diğer şifalı bitkilerle kombinasyon halinde kullanıldıklarında sinerjistik terapötik etkileriyle bilinirler [ 4 ] T. belerica'nın bireysel hipolipidemik potansiyeline kıyasla [ 5]. Benzer şekilde, poliherbal bir formülasyon olan Trikatu, Z. officinalis [ 8 , 9 ] ve P. nigrum [ 10 , 11 ] ile karşılaştırıldığında bozulmuş lipidi daha iyi bir şekilde düzeltir [ 6 ]. Mevcut çalışma ayrıca O. mascula'nın bireysel etkilerine kıyasla karışım formundaki etkinliğinin ve güvenliğinin daha iyi olduğunu kanıtlamaktadır [ 16 ].

            Git: Çözüm
            Bu bulgular, Zingiber officinalis , Terminalia belerica ve Orchis mascula'yı içeren değiştirilmiş formülasyonun antidislipidemik, antihipertansif, antioksidan ve endotel modüle edici ajan olarak nispeten daha etkili olduğunu ve ana formülasyonları ZPTO veya POL-10'a kıyasla daha iyi güvenlik profili sunduğunu göstermektedir. Bununla birlikte, ZTO'nun klinik denemeler için kullanılabilir hale getirilmeden önce fitokimyasal, toksikolojik ve farmakolojik yönleri hakkında daha ayrıntılı çalışmaların yapılması gerekmektedir.

            Git: Kısaltmalar
            ZPTO: (Z) Zingiber officinalis ; P: Piper nigrum ; T: Terminalia belerica ; O: Masküla orkidesi ; SHR: Kendiliğinden hipertansif sıçanlar; WKY: Wistar Kyoto fareleri; SD: Sprague – Dawley Sıçanları; EC50: %50 etki üreten etkili konsantrasyon; PE: Fenilefrin; ACh: Asetilkolin; CRC'ler: Konsantrasyon-tepki eğrileri; DPPH: 1,1-difenil-2-pikril-hidrazil; AI: Aterojenik indeks.

            Git: Rekabet eden çıkarlar
            Yazarlar, rekabet eden çıkarları olmadığını beyan eder.

            Git: Yazar katkıları
            AHG projeyi tasarladı, çalışmayı denetledi ve taslağın son halini inceledi. NA literatür taraması yaptı ve deneysel çalışma yürüttü. NA ve MHM verileri topladı ve analiz etti, istatistiksel analiz gerçekleştirdi ve son taslağı hazırladı. Tüm yazarlar, yayınlanmak üzere son taslağı okudu ve onayladı.

            Git: yazarların bilgileri
            NA, Karaçi Üniversitesi, Karaçi, Pakistan, Eczacılık Fakültesi, Farmakoloji Anabilim Dalı Doktora Bursiyeriydi; Şu anda NA, Karaçi, Pakistan merkezli ADInstruments Australia'nın Pakistan için Ülke Müdürüdür.

            MHM, Ağa Han Üniversitesi Tıp Fakültesi, Karaçi-74800, Pakistan, Biyolojik ve Biyomedikal Bilimler Bölümü, Doğal Ürün Araştırma Bölümü'nde Yardımcı Doçenttir.

            AHG, The Aga Khan University Medical College, Karachi-74800, Pakistan, Biyolojik ve Biyomedikal Bilimler Bölümü, Doğal Ürün Araştırma Bölümü'nde Profesördür (izinli izinlerde); AHG şu anda Mekelle Üniversitesi, Mekelle, Etiyopya Sağlık Bilimleri Fakültesi'nde Tandem Dekanı olarak görev yapmaktadır.

            Git: Yayın öncesi tarih
            Bu makalenin yayın öncesi geçmişine buradan erişilebilir:

            http://www.biomedcentral.com/1472-6882/13/371/prepub

            Git: Teşekkür
            Bu çalışma, Pakistan Bilim Vakfı tarafından PSF/P&D/A.Sc araştırma hibeleri aracılığıyla desteklenmiştir. (104) ve PSF/R&D/S-AKU/Bio (377).

            Git: Referanslar
            • Kearney PM, Whelton M, Reynolds K, Muntner P, Whelton PK, J H. Küresel hipertansiyon yükü: dünya çapındaki verilerin analizi. Lancet. 2005; 13 :217–223. [ PubMed ] [ Google Akademik ]
            • Whelton PK, He J, Appel LJ. et al. Ulusal Yüksek Tansiyon Eğitim Programı Koordinasyon Komitesi: Hipertansiyonun birincil önlenmesi: Ulusal Yüksek Tansiyon Eğitim Programından klinik ve halk sağlığı danışmanlığı. JAMA. 2002; 13 :1882–1888. doi: 10.1001/jama.288.15.1882. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Aziz N, Mehmood MH, Mandukhal SR, Bashir S, Raoof S, Gilani AH. Bir poliherbal formülasyonun (POL-10) antihipertansif, antioksidan, antidislipidemik ve endotel modüle edici aktiviteleri Vascul Pharmacol. 2009; 13 :57–64. doi: 10.1016/j.vph.2008.09.003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Saravanan S, Srikumar R, Manikandan S, Jeya Parthasarathy N, Sheela Devi R. Triphala'nın deneysel olarak indüklenen hiperkolesteremik sıçanlarda hipolipidemik etkisi. Yakugaku Zasshi. 2007; 13 :385–388. doi: 10.1248/yakushi.127.385. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Shaila HP, Udupa SL, Udupa AL. Deneysel olarak indüklenen aterosklerozda üç yerli ilacın hipolipidemik aktivitesi. Int J Cardiol. 1998; 13 :119–124. doi: 10.1016/S0167-5273(98)00281-2. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Sivakumar V, Sivakumar S. Yerli bir bitkisel bileşik preparasyonu 'Trikatu'nun aterojenik diyetin ve standart diyetle beslenen Rattus norvegicus'un lipid profilleri üzerindeki etkisi . Fitoterapi Arş. 2004; 13 :976–981. doi: 10.1002/ptr.1586. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • dedi. Doğu ilaçlarının Hamdard farmakopesi. Karaçi, Pakistan: Times basını; 1970. [ Google Akademik ]
            • Ranilla LG, Kwon YI, Apostolidis E, Shetty K. Latin Amerika'da yaygın olarak kullanılan şifalı bitkiler, şifalı bitkiler ve baharatların hiperglisemi ve hipertansiyonu ile ilgili anahtar enzimlere karşı fenolik bileşikler, antioksidan aktivite ve in vitro inhibe edici potansiyel. Bioresource Technol. 2010; 13 :4676–4689. doi: 10.1016/j.biortech.2010.01.093. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Saraswat M, Suryanarayana P, Reddy PY, Patil MA, Balakrishna N, Reddy GB. Zingiber officinalis'in antiglikasyon potansiyeli ve sıçanlarda diyabetik kataraktı geciktirme. Mol Vis. 2010; 13 :1525–1537. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Gülçin I. Karabiber ( Piper nigrum ) tohumlarının antioksidan ve radikal süpürücü aktiviteleri. Int J Food Sci Nutr. 2005; 13 :491–499. doi: 10.1080/09637480500450248. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kaleem M, Sheema H, Sarmad H, Bano B. Alloxan ile indüklenen diyabetik sıçanlarda Piper nigrum ve Vinca rosea'nın koruyucu etkileri . Indian J Physiol Pharmacol. 2005; 13 :65–71. [ PubMed ] [ Google Akademik ]
            • Nampoothiri SV, Binil Raj SS, Prathapan A, Abhilash PA, Arumughan C, Sundaresan A. Terminalia bellerica'nın meyve perikarpından elde edilen metanol ekstraktının ve bunun farklı çözücü fraksiyonlarının in vitro antioksidan aktiviteleri . Nat Ürün Arş. 2011; 13 :277–287. doi: 10.1080/14786419.2010.482053. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pahuja M, Mehla J, Kumar Gupta Y. Pentilentetrazolde Orchis mascula yumrusunun hidro-alkolik ekstraktının antikonvülsan ve antioksidatif aktivitesi ve sıçanlarda maksimum elektroşok kaynaklı nöbetler. J Etnofarmakol. 2012; 13 :23–27. doi: 10.1016/j.jep.2012.04.006. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ghayur MN, Gilani AH. Zencefil, voltaja bağlı kalsiyum kanallarını bloke ederek kan basıncını düşürür. J Cardiovasc Pharmacol. 2005; 13 :74–80. doi: 10.1097/00005344-200501000-00013. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ghayur MN, Gilani AH, Afridi MB, Houghton PJ. Zencefil sulu ekstraktının ve fenolik bileşenlerinin kardiyovasküler etkilerine birden fazla yoldan aracılık edilir. Vaskül Eczacılık. 2005; 13 :234–241. doi: 10.1016/j.vph.2005.07.003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Aziz N, Mehmood MH, Siddiqi HS, Mandukhail SU, Sadiq F, Maan W, Gilani AH. Orchis mascula'nın antihipertansif, antidislipidemik ve endotel modüle edici aktiviteleri . Hipertans Res. 2009; 13 :997–1003. doi: 10.1038/hr.2009.148. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Gilani AH, Atta-ur-Rahman. Etnofarmakolojideki eğilimler. J Etnofarmakol. 2005; 13 :43–49. doi: 10.1016/j.jep.2005.06.001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Williamson EM, Okpako DT, Evans FJ. Fitoterapi araştırmalarında farmakolojik yöntemler. 1. Chichester: John Wiley ve Oğulları; 1996. Bitki materyalinin seçimi, hazırlanması ve farmakolojik değerlendirmesi; s. 15–23. [ Google Akademik ]
            • Ulusal Araştırma Konseyi. Laboratuvar hayvanlarının bakımı ve kullanımı için kılavuz. Washington: Ulusal Akademi Basını; 1996. sayfa 1–7. [ Google Akademik ]
            • Harkness JE, Wagner JE. Tavşan ve kemirgenlerin biyolojisi ve tıbbı. 4. Hagerstown: Williams ve Wilkins; 1995. [ Google Akademik ]
            • Ichihashi T, Izawa M, Miyata K, Mizui T, Hirano K, Takagishi Y. S-8921'in sıçanlarda hipokolesterolemik etkisinin mekanizması: S-8921, ileal safra asidi emilimini inhibe eder. J Pharmacol Uzm. 1998; 13 :43–50. [ PubMed ] [ Google Akademik ]
            • Khanna AK, Rizvi F, Chander R. Phyllanthus niruri'nin hiperlipemik sıçanlarda lipit düşürme aktivitesi . J Etnofarmakol. 2002; 13 :19–22. doi: 10.1016/S0378-8741(02)00136-8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Berroughui H, Ettaib A, Herrera Gonzalez MD, Alvarez de Sotomayor M, Bennari-Kabchi N, Hmamouchi M. Argan yağının ( Argan spinosa L.) Meriones Shawi sıçanlarında hipolipidemik ve hipokolesterolemik etkisi. J Etnofarmakol. 2003; 13 :15–18. doi: 10.1016/S0378-8741(03)00176-4. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Mandukhail SU, Aziz N, Gilani AH. Morinda citrifolia (Noni) meyvesinin, yapraklarının ve kök özlerinin antidislipidemik etkileri üzerine araştırmalar . Lipitler Sağlık Dis. 2010; 13:88 . doi: 10.1186/1476-511X-9-88. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Furchgott RF, Zawadski JV. Asetilkolin ile arteriyel düz kasın gevşemesinde endotel hücrelerinin zorunlu rolü. Doğa. 1980; 13 :373–376. [ PubMed ] [ Google Akademik ]
            • Siddiqi HS, Mehmood MH, Rehman NU, Gilani AH. Viola odorata ekstresinin antihipertansif ve antidislipidemik aktiviteleri üzerine çalışmalar . Lipitler Sağlık Dis. 2012; 13 :6. doi: 10.1186/1476-511X-11-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Misbah H, Aziz AA, Aminudin N. Ficus deltoidea meyve özlerinin ve fraksiyonlarının antidiyabetik ve antioksidan özellikleri. BMC Tamamlayıcı Altern Med. 2013; 13 :118. doi: 10.1186/1472-6882-13-118. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Teke GN, Elisée KN, Roger KJ. Cupressus lusitanica Mill. uçucu yağının kimyasal bileşimi, antimikrobiyal özellikleri ve toksisite değerlendirmesi . Kamerun'dan ayrıldı. BMC Tamamlayıcı Altern Med. 2013; 13 :130. doi: 10.1186/1472-6882-13-130. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kuroda M, Tanzawa K, Tsujita Y, Endo A. Triton WR-1339 kaynaklı hiperlipidemide hepatik kolesterol sentezinin ve serum kolesterol düzeylerinin yükselmesi için mekanizma. Biochimica Biophysica Açta. 1977; 13 :119–125. doi: 10.1016/0005-2760(77)90238-7. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Schotz MC, Scanu A, Sayfa IH. Triton'un sıçan plazmasının lipoprotein lipazı üzerindeki etkisi. Ben J Physiol. 1957; 13 :399–402. [ PubMed ] [ Google Akademik ]
            • NndeNigris F, Lerman A, Ignarro LJ, Williams-Ignarro S, Sica V, Baker AH, Lerman LO, Geng YJ, Napoli C. Oksidasyona duyarlı mekanizmalar, vasküler apoptoz ve ateroskleroz. Trendler Mol Med. 2003; 13 :351–359. doi: 10.1016/S1471-4914(03)00139-4. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Hayashi T, Ishikawa T, Naito M, Kuzuya M, Funaki C, Asai K, Kuzuya F. Düşük seviyeli hiperlipidemi, domuz koroner arterlerinin endotele bağımlı gevşemesini iki mekanizma ile bozar. Endotelde fonksiyonel değişiklik ve endotele bağlı gevşemenin iki aracı tarafından bozulması. ateroskleroz. 1991; 13 :23–33. doi: 10.1016/0021-9150(91)90229-V. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Heuman DM, Vlahcevic ZR, Bailey ML, Hylemon PB. Safra asidi sentezinin düzenlenmesi.II. Safra asidi beslemesinin sıçanlarda hepatik kolesterol ve safra asidi sentezini düzenleyen enzimler üzerindeki etkisi. hepatoloji 1988; 13 :892–897. doi: 10.1002/hep.1840080431. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Thounaojam M, Jadeja R, Ansarullah Devkar R, Ramachandran AV. Yüksek yağlı diyetle beslenen hiperlipidemik Sıçanlarda lipid ve kolesterol metabolizmasının düzensizliği: Sida rhomboidea roxb'nin koruyucu etkisi. yaprak özü. J Sağlık Bilimleri 2009; 13 :413–420. doi: 10.1248/jhs.55.413. [ CrossRef ] [ Google Akademik ]
            • Kinosian B, Glick H, Preiss L, Puder KL. Kolesterol ve koroner kalp hastalığı: erkeklerde riskleri düzey ve oranlardaki değişikliklerle tahmin etmek. J Investing Med. 1995; 13 :443–450. [ PubMed ] [ Google Akademik ]
            • Wagner AM, Jorba O, Bonet R, Ordonez-Llanos J, Perez A. Diyabetik dislipidemi tedavisinde tek başına ve düşük doz kombinasyonunda atorvastatin ve gemfibrozilin etkinliği. J Clin Endocrinol Metab. 2003; 13 :3212–3217. doi: 10.1210/jc.2003-030153. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Mulvany MJ, Halpern W. Kendiliğinden hipertansif ve normotansif sıçanlarda küçük arteriyel dirençli damarların kasılma özellikleri. Sirk Res. 1977; 13 :19–26. doi: 10.1161/01.RES.41.1.19. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vanhoutte PM, Boulanger CM. Hipertansiyonda endotele bağımlı yanıtlar. Hipertans Res. 1995; 13 :87–98. doi: 10.1291/hypres.18.87. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Bartus M, Lomnicka M, Lorkowska B, Franczyk M, Kostogrys RB, Pisulewski PM, Chlopicki S. Hipertrigliseridemi, hiperkolesterolemi değil, sıçanda endotel disfonksiyonuna neden olur. Pharmacol Rep. 2005; 13 :127–137. [ PubMed ] [ Google Akademik ]
            • Akpaffiong MJ, Taylor AA. Spontan hipertansif sıçanlarda antioksidanların antihipertansif ve vazodilatör etkileri. Ben J Hypertens. 1998; 13 :1450–1460. doi: 10.1016/S0895-7061(98)00183-6. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vijayakumar RS, Surya D, Nalini N. Karabiberin ( Piper nigrum L.) ve yüksek yağlı diyet kaynaklı oksidatif strese sahip sıçanlarda piperinin antioksidan etkinliği. Redox Rep. 2004; 13 :105–110. doi: 10.1179/135100004225004742. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pogan L, Garneau L, Bissonnette P, Wu L, Sauve R. Kendiliğinden hipertansif sıçanlardan vasküler endotel hücrelerinde anormal Ca ++ sinyali: serbest radikallerin rolü. J Hipertens. 2001; 13 :721–730. doi: 10.1097/00004872-200104000-00009. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lee SA, Hong SS, Han XH, Hwang JS, Oh GJ, Lee KS, Lee MK, Hwang BY, Ro JS. Monoamin oksidaz ve antidepresan benzeri aktivite üzerinde inhibitör etkisi olan Piper longum meyvelerinden elde edilen piperin . Kimya Eczanesi Bull. 2005; 13 :832–835. doi: 10.1248/cpb.53.832. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Bhandari U, Kanojia R, Pillai KK. Zingiber officinale'nin etanolik ekstraktının diyabetik sıçanlarda dislipidemi üzerindeki etkisi. J Etnofarmakol. 2005; 13 :227–230. doi: 10.1016/j.jep.2004.11.011. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Latha PCR, Daisy P. Terminalia belerica roxb'nin Etkisi. streptozotosin diyabetik sıçanlarda biyokimyasal parametreler üzerine meyve özü. Int J Pharmacol. 2010; 13 :89–96. [ Google Akademik ]
            • Khan AU, Gilani AH. Antihipertansif etkisi için Terminalia belerica'nın farmakodinamik değerlendirmesi . J Gıda İlaç Anal. 2008; 13 :6–14. [ Google Akademik ]

            Yorum yap


            • #7
              6-Gingerol ve 6-Shogaol'ün Candida albicans'a Karşı Hifal İnhibisyonu Nedeniyle Antibiyofilm ve Antivirülans Aktiviteleri

              Jin-Hyung Lee , 1, † Yong-Guy Kim , 1, † Pilju Choi , 2 Jungyeob Ham , 2 Jae Gyu Park , 3, * ve Jintae Lee 1, *
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              1 Kimya Mühendisliği Okulu, Yeungnam Üniversitesi, Gyeongsan, Güney Kore
              2 Doğal Ürünler Araştırma Enstitüsü, Kore Bilim ve Teknoloji Enstitüsü, Gangneung, Güney Kore
              3 Advanced Bio Convergence Center, Pohang Technopark Vakfı, Pohang, Güney Kore
              Düzenleyen: You-Hee Cho, CHA Üniversitesi, Güney Kore
              İnceleyen: Hee-Deung Park, Wisconsin-Madison Üniversitesi, Amerika Birleşik Devletleri; Qing-shan Shi, Guangdong Mikrobiyoloji Enstitüsü (CAS), Çin
              *Yazışma: Jae Gyu Park gro.ptgnahop@krapeaj
              Jintae Lee rk.ca.uny@eeltj
              †Bu yazarlar bu çalışmaya eşit katkıda bulunmuştur. İlişkili Veriler

              Tamamlayıcı Malzemeler
              Git: Soyut

              Candida albicans fırsatçı bir patojendir ve kandidiyazdan sorumludur. C. albicans çeşitli biyotik ve abiyotik yüzeylerde kolayca biyofilmler oluşturur ve bu biyofilmler lokal ve sistemik enfeksiyonlara neden olabilir. C. albicans biyofilmleri, kendi serbest mayasından antifungal ajanlara karşı daha dirençlidir ve konakçı immün yanıtlarından daha az etkilenir. Maya hücrelerinin hif hücrelerine geçişi, biyofilm oluşumu için gereklidir ve çok önemli bir virülans faktörü olduğuna inanılmaktadır. Bu çalışmada, zencefilin altı bileşeninin flukonazole dirençli bir C. albicans'a karşı antibiyofilm ve antivirülans aktiviteleri araştırıldı.gerilmek. 6-gingerol, 8-gingerol ve 6-shogaol'ün biyofilm oluşumunu etkili bir şekilde engellediği bulundu. Özellikle 10 μg/ml'de 6-shogaol, C. albicans biyofilm oluşumunu önemli ölçüde azalttı ancak planktonik hücre büyümesi üzerinde hiçbir etkisi olmadı. Ayrıca 6-gingerol ve 6-shogaol, gömülü kolonilerde ve serbest yaşayan planktonik hücrelerde hifal büyümesini inhibe etti ve hücre agregasyonunu önledi. Ayrıca 6-gingerol ve 6-shogaol, test edilen konsantrasyonlarda toksisiteye neden olmadan bir nematod enfeksiyon modelinde C. albicans virülansını azaltmıştır. RNA-seq ve qRT-PCR kullanılarak yapılan transkriptomik analiz, 6-gingerol ve 6-shogaol'ün birkaç taşıyıcıyı ( CDR1, CDR2 ve RTA3 ) indüklediğini, ancak hifa/biyofilm ile ilgili birkaç genin (Gözlenen fenotipik değişiklikleri destekleyen ECE1 ve HWP1 ). Bu sonuçlar, ilaca dirençli bir C. albicans suşuna karşı zencefil bileşenlerinin, 6-gingerol ve 6-shogaol'ün antibiyofilm ve antivirülans aktivitelerini vurgulamaktadır .

              Anahtar Kelimeler: antivirülans, biyofilm, C. albicans , gingerol, hyphae, shogaol
              Git: giriiş

              Candida albicans, normalde vajina, ağız ve rektum gibi deri ve mukoz membranlarda bulunan fırsatçı bir patojendir. C. albicans, konakçı dokuları ve çeşitli kalıcı tıbbi cihazları kolonize eder (Ramage ve diğerleri, 2005 ; Sardi ve diğerleri, 2013 ) ve biyotik ve abiyotik yüzeyler üzerinde hali hazırda, geleneksel mantar önleyici terapötiklere ve konakçı bağışıklık sistemine (Nobile) özünde dirençli olan biyofilmler geliştirir. ve diğerleri, 2006b ). C. albicansoval tomurcuklanan mayalar, yalancı hifler veya gerçek hifler olarak büyüyebilir. Biyofilm gelişimi için, maya hücreleri başlangıçta bir yüzeye bağlanır ve bunu daha sonra germ tüpü oluşumu ve hif geçişi izler ve olgun biyofilmler tipik olarak 24 saat içinde oluşur (Nobile ve diğerleri, 2006b ) . Maya hücrelerinin hif hücrelerine geçişi, biyofilm olgunlaşmasını düzenliyor gibi görünmektedir ve hif geçişi, Candida enfeksiyonlarında çok önemli bir virülans faktörü olarak kabul edilir (Carradori ve diğerleri, 2016 ). Ayrıca C. albicans'ın birçok klinik izolatı , kandidiyazı tedavi etmek için kullanılan azoller ve polienler gibi ticari antifungallere karşı ilaç direnci sergiler (Tobudic ve diğerleri, 2010 ; Taff ve diğerleri, 2013 ).; Sandai ve diğerleri, 2016 ). Bu nedenle, antifungal direnç geliştirmeye yatkın olmayan yeni antivirulans ilaçlar, C. albicans biyofilmlerini ve virülansı ortadan kaldırmak için gereklidir.

              Fitokimyasallar, ilaca dirençli mikroorganizmalara karşı antimikrobiyal ve antibiyofilm ajanlar için önemli kaynaklardır (Nascimento ve diğerleri, 2000 ). Son zamanlarda yapılan çeşitli çalışmalar, zencefil bileşenlerinin, Pseudomonas aeruginosa (Kim ve Park, 2013 ) ve Salmonella Typhimurium ve Escherichia coli (Khiralla, 2015 ) ve zingerone (Kumar ve diğerleri) gibi patojenik bakterilere karşı antibiyofilm aktivitelerine sahip olduğunu göstermiştir. ., 2013 ), rafinoz (Kim ve diğerleri, 2016a ), 6-gingerol (Kim ve diğerleri, 2015 ) ve 6- ve 8-gingerol analoglarına (Choi ve diğerleri, 2017 ) karşıP. aeruginosa . Bununla birlikte, zencefil bileşenlerinin antibiyofilm aktiviteleri herhangi bir maya türünde çalışılmamıştır.

              Bu çalışmada, 6-gingerol, 8-gingerol, 10-gingerol, 6-shogaol, 8-shogaol ve 10-shogaol olmak üzere altı zencefil bileşeninin antifungal dirençli C. albicans suşuna karşı antibiyofilm aktiviteleri ilk olarak araştırıldı. . İki aktif bileşik olan 6-gingerol ve 6-shogaol ayrıca hiphal ve virülans inhibisyonu açısından değerlendirildi. 6-gingerol ve 6-shogaol'ün morfolojik değişiklikler, biyofilm oluşumu ve C. albicans'ın hifal büyümesi üzerindeki etkilerini araştırmak için taramalı elektron mikroskobu (SEM) ve konfokal lazer tarama mikroskobu (CLSM) kullanıldı . 6-gingerol ve 6-shogaol'e maruz kaldıktan sonra C. albicans fizyolojisindeki değişikliklerin moleküler temeli de RNA-seq ve qRT-PCR kullanılarak araştırıldı. Ayrıca, bir6-gingerol ve 6-shogaol'ün antivirulans etkilerini doğrulamak için in vivo Caenorhabditis elegans modeli kullanıldı. Bu, C. albicans biyofilm oluşumunu ve hif oluşumunu inhibe etmek ve bu patojenin virülansını azaltmak için 6-gingerol veya 6-shogaol kullanımına ilişkin yayınlanacak ilk rapordur .

              Git: Malzemeler ve yöntemler

              Suşlar ve orta

              Bu çalışmada flukonazole dirençli C. albicans DAY185 suşu (minimum inhibitör konsantrasyon >1.024 μg/ml) kullandık . C. albicans, patates dekstroz ağarı (PDA) veya patates dekstroz suyu (PDB) içinde tutuldu. Bu çalışmada kullanılan zencefiloller ve shogaoller (6-gingerol, 8-gingerol, 10-gingerol, 6-shogaol, 8-shogaol ve 10-shogaol) Sigma-Aldrich'ten (St. Louis, ABD) satın alınmış ve içinde çözülmüştür. dimetil sülfoksit (DMSO). Tüm deneyler için negatif kontrol olarak DMSO kullanıldı ve ortamdaki DMSO konsantrasyonu %0.1'i (hacim/hacim) aşmadı, bu da antibiyofilm veya antivirülans aktivitelerini etkilemedi. Hücre büyümeleri ve bulanıklıklar, 620 nm'de spektrofotometre (UV-160, Shimadzu, Japonya) kullanılarak ölçüldü. Biyofilm oluşumu için testler

              Candida biyofilmleri, daha önce bildirildiği gibi 96 oyuklu polistiren plakalar üzerinde geliştirilmiştir (Lee ve diğerleri, 2011 ). Kısaca, 2 günlük tek bir koloni 25 ml PDB'ye aşılandı ve gece boyunca 37°C'de inkübe edildi. 600 nm'de 0.1 başlangıç ​​bulanıklığında gecelik kültürler daha sonra bir gingerol veya bir shogaol ile veya bunlar olmadan PDB'ye (son hacim 300 ul) aşılandı ve 37°C'de çalkalamadan 24 saat süreyle inkübe edildi. 96 oyuklu plakalara yapışan biyofilm hücreleri, 20 dakika boyunca %0.1 kristal viyole (Sigma-Aldrich, St. Louis, ABD) ile boyandı, tekrar tekrar steril damıtılmış suyla yıkandı ve %95 etanol içinde yeniden süspanse edildi. Plakalar 570 nm'de okundu ve sonuçlar en az altı tekrarın ortalaması olarak sunuldu. Biyofilm oluşumunun konfokal lazer taramalı mikroskopi tahlili

              C. albicans biyofilmleri, 24 saat çalkalanmadan 6-gingerol veya 6-shogaol ile veya bunlar olmadan 96 oyuklu plakalarda büyütüldü. Planktonik hücreler daha sonra üç kez suyla yıkanarak çıkarıldı ve biyofilmler karboksifloresin diasetat süksinimidil ester (bir minimal floresan lipofil; Invitrogen, Molecular Probes, Inc, Eugene, ABD) ile boyandı (Lee ve diğerleri, 2016 ) . Plaka tabanları daha sonra bir konfokal lazer mikroskobu (Nikon Eclipse Ti, Tokyo) altında bir (488 nm) Ar lazer (emisyon 500 ila 550 nm) kullanılarak görselleştirildi ve daha sonra COMSTAT biyofilm yazılımı (Heydorn ve diğerleri, 2000) kullanıldı . biyohacimleri hesapla (μm 3 μm −2), ortalama biyofilm kalınlıkları (μm) ve substrat kapsamları (%). Her deneysel koşul altında iki bağımsız kültür gerçekleştirildi ve en az 10 rasgele pozisyon tahlil edildi. C. albicans koloni morfolojilerinin katı ortam üzerinde gözlemlenmesi

              C. albicans'ın taze hazırlanmış bir gliserol stoğu, 6-gingerol veya 6-shogaol ile veya 6-shogaol ile desteklenmiş veya onsuz PDA plakaları üzerinde sürme için kullanıldı. Plakalar daha sonra 7 gün boyunca 37°C'de inkübe edildi ve bir iRiS™ Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems, Kore) kullanılarak koloni morfolojilerindeki zamansal değişiklikler gözlemlendi. Sıvı ortamda hif tahlili

              Hücre agregasyonu daha önce tarif edildiği gibi analiz edildi (Zelante ve diğerleri, 2012 ). Kısaca, C. albicans hücreleri , 6-gingerol veya 6-shogaol içeren veya içermeyen 14 ml test tüplerinde 105 CFU/ml yoğunlukta 2 ml PDB ortamına veya RPMI-1640 ortamına aşılandı ve 37°C'de 24 saat kuluçkalandı. 250 rpm'de sallayarak h. Hücre kültürleri (2 mi) daha sonra cam tabanlı tabaklara aktarıldı ve gözlemlendi. Toplanan hücreler, iRiS TM Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems, Kore) kullanılarak 4x büyütmede parlak alanda görüntülendi . En az dört bağımsız deney yapıldı. Hifal oluşumunun mikroskobik görüntülemesi

              Daha önce açıklandığı gibi bir naylon zara bağlı biyofilm hücrelerinin morfolojilerini gözlemlemek için taramalı elektron mikroskobu (SEM) kullanıldı (Kim ve diğerleri, 2016b ). Kısaca, bir naylon zar 0.5 x 0.5 cm'lik parçalar halinde kesildi ve 6-gingerol veya 6-shogaol ile veya bunlar olmadan büyütülen C. albicans içeren 96 oyuklu plakalara yerleştirildi ve 24 saat 37°C'de inkübe edildi. Naylon membrana yapışan hücreler, 24 saat boyunca glutaraldehit (%2.5) ve formaldehit (%2) ile sabitlendi ve ardından osmiyum kullanılarak sonradan sabitlendi, bir etanol serisi (50, 70, 80, 90, 95 ve 100) ile dehidre edildi. %) ve izoamil asetat. Kritik nokta kurutmasının ardından hücreler, 15 kV voltajda bir S-4100 taramalı elektron mikroskobu (Hitachi, Japonya) kullanılarak incelendi ve görüntülendi. RNA-Seq ve kantitatif gerçek zamanlı PCR (qRT-PCR) için RNA izolasyonu

              Transkriptomik analizler için, OD 600'de 0.1 başlangıç ​​bulanıklığında 25 ml C. albicans , 250 ml Erlenmeyer şişelerinde PDB'ye aşılandı ve 6 varlığında veya yokluğunda ajitasyonla (250 rpm) 37°C'de 4 saat süreyle inkübe edildi. -gingerol (50 μg/ml) veya 6-shogaol (10 μg/ml). RNA degradasyonunu önlemek için hücrelere RNaz inhibitörü (RNAlater, Ambion, TX, ABD) eklendi. Toplam RNA, sıcak asidik fenol yöntemi (Amin-ul Mannan ve diğerleri, 2009 ) kullanılarak izole edildi ve RNA, bir Qiagen RNeasy mini Kit (Valencia, CA, ABD) kullanılarak saflaştırıldı. RNA-Seq ve RNA kütüphanesi hazırlama ve sıralama

              RNA-Seq için, SMARTer Stranded RNA-Seq Kit (Clontech Laboratories, Inc., ABD) kullanılarak bir RNA kütüphanesi oluşturuldu. Kısaca, 2 μg toplam RNA, oligo-dT ile süslenmiş manyetik boncuklarla inkübe edildi ve ardından mRNA dışındaki RNA'lar, yıkama solüsyonu kullanılarak çıkarıldı. Kitaplık üretimi, başlatıcı/durdurucu heterodimerlerin manyetik boncuklara bağlı poli(A) RNA'ya rasgele hibridizasyonuyla başlatıldı. Bu başlatıcı/durdurucu heterodimerler, Illumina uyumlu bağlayıcı dizileri içeriyordu. Tek tüplü bir ters transkripsiyon ve ligasyon reaksiyonu, başlatıcıyı, yeni sentezlenen cDNA girişinin durdurucuya bağlandığı bir sonraki hibridize heterodimere uzattı. Kütüphaneyi boncuklardan serbest bırakmak için ikinci zincir sentezi gerçekleştirildi ve ardından kütüphane amplifiye edildi. Kütüphane güçlendirildiğinde barkodlar tanıtıldı. RNA-Seq veri analizi

              mRNA-Seq okumaları, hizalama dosyasını elde etmek için TopHat yazılımı (Trapnell ve diğerleri, 2009 ) kullanılarak haritalandı . Diferansiyel olarak eksprese edilen genler, Bedtools (Quinlan ve Hall, 2010 ) kullanılarak benzersiz ve çoklu hizalamalardan elde edilen sayımlara dayalı olarak tanımlandı . RT (Okuma Sayısı) verileri, Bioconductor (Gentleman ve diğerleri, 2004 ) kullanılarak Quantile normalizasyonu ile işlendi . Hizalama dosyaları ayrıca transkriptleri birleştirmek, bolluklarını tahmin etmek ve Kol Düğmeleri kullanılarak genlerin veya izoformların diferansiyel ifadelerini saptamak için kullanıldı. Gen bölgelerinin ekspresyon seviyelerini belirlemek için FPKM (milyon fragman başına ekzonun kilobazı başına fragmanlar) kullanıldı. Gen sınıflandırması, DAVID (http://david.abcc.ncifcrf.gov/ ). RNA-seq verileri, NCBI Gene Expression Omnibus'ta saklandı ve GSE117201 erişim numarasıyla erişilebilir . Diferansiyel olarak eksprese edilen gen çalışması, ExDEGA (Excel tabanlı Differentially Expressed Gene Analysis) aracında DEG analiz yöntemi ile analiz edildi ve biyolojik süreçlere göre sınıflandırıldı. QuickGO'da ( www.ebi.ac.uk/QuickGO/ ) gen ontoloji analizi yapıldı . RNA-seq verilerinin KEGG (Kyoto Genler ve Genomlar Ansiklopedisi) yolu analizleri, KEGG Eşleyici aracı ( //www.genome.jp/kegg/tool/map_pathway2.html ) ile yapıldı . qRT-PCR

              Hif ile ilişkili genlerin ( ALS1, ALS3, ECE1, ECM38, EED1 EFG1, HYR1, HWP1, RBT1, SAP4 ve UME6 ) ekspresyonlarını belirlemek için qRT-PCR kullanıldı . QRT-PCR için kullanılan spesifik primerler ve temizlik geni ( RDN18 ), Ek Tablo S2'de listelenmiştir . Kullanılan qRT-PCR yöntemi Kim ve diğ. ( 2016b ) ve SYBR Green ana karışımı (Applied Biosystems, Foster City, ABD) ve bir ABI StepOne Real-Time PCR System (Applied Biosystems) kullanılarak gerçekleştirildi. En az iki bağımsız kültür kullanıldı. Caenorhabditis elegans modeli kullanılarak antivirülans ve toksisite analizleri

              Antivirulans tahlili için, C. elegans suşu fer-15 (b26) kullandık ; fem-1 (hc17) , daha önce açıklandığı gibi (Manoharan ve diğerleri, 2017a ). Kısaca, senkronize yetişkin solucanlar C. albicans ile beslendi.25°C'de 4 saat çimler ve daha sonra üç kez M9 tamponu ile yıkandıktan sonra toplandı. Daha sonra 6-gingerol (10 veya 50 ug/ml) veya 6-shogaol (10 veya 50 ug/ml) içeren veya içermeyen PDB ortamı (300 ul) içeren 96 oyuklu plakaların her bir oyuğuna yaklaşık 30 solucan eklendi. Tahlil plakaları daha sonra 4 gün boyunca 25°C'de çalkalanmadan inkübe edildi. Toksisite analizleri için, enfekte olmayan 30 solucan, M9 tamponu içeren 96 oyuklu bir kabın tekli kuyularına pipetlendi ve 6-gingerol veya 6-shogaol çözeltileri, (0, 100, 200 veya 500 μg//) nihai konsantrasyonlara eklendi. ml) C. albicans olmadan. Plakalar daha sonra 25°C'de çalkalanmadan 4 gün süreyle inkübe edildi. Üç kopya halinde üç bağımsız deney yapıldı. Sonuçlar, 4 günlük inkübasyondan sonra platin tele dokunmaya verilen tepkilerle belirlendiği üzere, canlı solucanların (hayatta kalma) yüzdeleri olarak ifade edilir. Gözlemler, bir iRiS™ Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems, Kore) kullanılarak yapıldı. istatistiksel analiz

              Testler için çoğaltma sayıları yukarıda verilmiştir ve sonuçlar ortalama ± standart sapmalar olarak ifade edilmiştir. İstatistiksel analiz, tek yönlü ANOVA ve ardından SPSS sürüm 23 (SPSS Inc., Chicago, IL, ABD) kullanılarak Dunnett testi ile yapıldı. < 0.05 olan P değerleri önemli kabul edildi.

              Git: Sonuçlar

              Gingerollerin ve shogaollerin C. albicans biyofilm oluşumu üzerindeki inhibitör etkileri

              Başlangıçta, üç zencefilolün (6-gingerol, 8-gingerol ve 10-gingerol) ve üç shogaolün (6-shogaol, 8-shogaol ve 10-shogaol) flukonazole dirençli C. albicans DAY185 tarafından biyofilm oluşumunu etkileyip etkilemediğini araştırdık, hücre büyümesi de bu ajanların mevcudiyetinde ölçülmüştür. Altı bileşikten 6-gingerol, 8-gingerol ve 6-shogaol, 10, 50 ve 100 μg/ml konsantrasyonlarda biyofilm oluşumunu önemli ölçüde azaltırken, 10-gingerol, 8-shogaol ve 10-shogaol 100 μg'de /ml'nin hiçbir etkisi olmadı (Şekil​(Şekil 1).1). Özellikle 6-shogaol, biyofilm oluşumunu doza bağlı bir şekilde en önemli şekilde inhibe etti (Şekil​(Şekil1D).1D). Spesifik olarak 6-shogaol, biyofilm oluşumunu sırasıyla 10, 50 ve 100 μg/ml konsantrasyonlarda %85, %94 ve %94 oranında inhibe etti (Şekil​(Şekil1D).1D). Ek olarak, 50 μg/ml'de 6-gingerol ve 8-gingerol biyofilm oluşumunu sırasıyla %88 ve %80 oranında inhibe etti (Şekiller1A,B). Daha büyük karbon yan zincir sayılarının 10-gingerol, 8-shogaol ve 10-shogaol'de antibiyofilm aktivitesini azalttığı göründüğü için, zencefilollerin ve shogaollerin antibiyofilm aktivitelerinin karbon yan zincirlerinin sayısıyla ilişkili olduğu ortaya çıktı (Şekiller1C,E,F). Özellikle, 100 μg/ml'ye kadar olan konsantrasyonlarda üç zencefilol veya üç shogaolden hiçbiri C. albicans'ın planktonik hücre büyümesini engellemedi (Şekiller1A–F).
              Resim, çizim vb. içeren harici bir dosya. Nesne adı fcimb-08-00299-g0001.jpg'dir.
              Şekil 1
              Gingerollerin ve shogaollerin C. albicans'a karşı antibiyofilm aktiviteleri . PDB ortamında C. albicans DAY185'e karşı üç zencefilolün (A-C) ve üç shogaolün (D-F) antibiyofilm aktiviteleri 24 saat kültürden sonra belirlendi. Çubuklar biyofilm oluşumunu gösterir ve çizgiler planktonik hücre büyümesini gösterir. Gingerollerin ve shogaollerin kimyasal yapıları gösterilmiştir. * P < 0.05'e karşı . işlenmemiş kontroller. Hiçbiri; işlenmemiş kontrol

              6-gingerol ve 6-shogaol'ün antifungal aktiviteleri minimum inhibitör konsantrasyonlar (MIC) ölçülerek araştırıldı ve 6-gingerol ve 6-shogaol için MIC'ler C. albicans'a karşı sırasıyla 1000 μg/ml ve > 2000 μg/ml idi . GÜN185. Bu sonuçlar, C. albicans tarafından biyofilm oluşumunun , fungisidal aktiviteleri tarafından değil, 6-gingerol ve 6-shogaol'ün antibiyofilm aktiviteleri tarafından etkili bir şekilde inhibe edildiği fikrini desteklemektedir . Ayrıca, planktonik hücre büyümesi üzerinde herhangi bir etkinin yokluğunda gözlenen biyofilm inhibisyonu, geleneksel fungisitlerin aksine, 6-gingerol ve 6-shogaol'ün ilaç direnci gelişimine daha az eğilimli olabileceğini düşündürmektedir.

              Konfokal lazer mikroskop görüntüleri, C. albicans'ın işlenmemiş kontrol numunelerinde yoğun biyofilmler oluşturduğunu ve 6-gingerol veya 6-shogaol biyofilm varlığında hücresel yoğunlukların ve kalınlıkların önemli ölçüde azaldığını gösterdi (Şekil​(Şekil2A).2A). Biyofilm azalması, 50 μg/ml'de 6-gingerol ve 10 μg/ml'de 6-shogaol'ün biyofilm biyokütlesini, ortalama kalınlığı ve substrat kapsamını önemli ölçüde azalttığını gösteren COMSTAT analizi ile daha da doğrulandı (Şekil​(Şekil2B).2B). Spesifik olarak, biyofilm biyokütlesi, kalınlığı ve substrat kapsamı, işlenmemiş kontrole kıyasla 6-shogaol tarafından %95'ten fazla azaltıldı.
              Resim, çizim vb. içeren harici bir dosya. Nesne adı fcimb-08-00299-g0002.jpg'dir.
              şekil 2
              6-gingerol ve 6-shogaol'ün biyofilmler üzerindeki inhibitör etkilerinin mikroskobik gözlemleri. Polistiren plakalar üzerinde C. albicans tarafından biyofilm oluşumu, konfokal lazer mikroskobu (A) ile 50 μg/ml'de 6-gingerol veya 10 μg/ml'de 6-shogaol varlığında gözlendi . Ölçek çubukları 100 μm'yi temsil eder. Biyofilm oluşumu COMSTAT (B) kullanılarak ölçüldü . * P < 0.05'e karşı . işlenmemiş kontroller. Hiçbiri; işlenmemiş kontrol 6-Gingerol ve 6-Shogaol hifal büyümesini ve hücre agregasyonunu inhibe etti

              6-gingerol ve 6-shogaol'ün C. albicans morfolojisi üzerindeki etkilerini incelemek için patates dekstroz agar (PDA) üzerinde C. albicans kolonilerinin geçici bir gözlemi yapıldı ve ayrıca taramalı elektron mikroskobu (SEM) kullanıldı. Tedavi edilmemiş C. albicans kolonilerinden hif çıkıntıları 3 günlük inkübasyondan sonra gözlenirken, 10 μg/ml'de 6-shogaol varlığında 7 gün boyunca bastırılmış hipal çıkıntılar (Şekil​(Şekil3A).3 A). Ayrıca, 10 μg/ml'de 6-shogaol'ün, 50 μg/ml'de 6-gingerol'den hif çıkıntılarını daha etkili bir şekilde bastırdığı bulundu. SEM analizi ayrıca 6-gingerol ve 6-shogaol'ün hifal oluşumunu önemli ölçüde bastırdığını doğruladı. Şekilde gösterildiği gibi​Şekil3B,3B6-gingerol veya 6-shogaol varlığında büyütülen biyofilmlerde daha kısa hifler ve daha fazla maya hücresi vardı.
              Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı fcimb-08-00299-g0003.jpg'dir.
              Figür 3
              6-gingerol ve 6-shogaol'ün C. albicans'ın hifal morfogenezi üzerindeki etkileri . Katı ortamda C. albicans morfolojisi (A) . C. albicans, 6-gingerol veya 6-shogaol'ün varlığında veya yokluğunda PDA katı plakaları üzerine çizildi. 37°C'de 7 gün inkübasyon sırasında koloni morfolojileri gözlendi. C. albicans biyofilmlerinde 6-gingerol veya 6-shogaol tarafından hipal büyümelerin inhibisyonu SEM (B) ile görselleştirildi . Ölçek çubuğu 30 μm'yi temsil eder. Hiçbiri; işlenmemiş kontrol

              Genel olarak, mayadan hifaya geçişin ve hücre agregasyonunun, C. albicans tarafından biyofilm gelişiminin önkoşulları olduğuna inanılmaktadır (Chandra ve diğerleri, 2001 ). Sıvı patates dekstroz suyu (PDB) ortamında, hifal inhibisyon 6-gingerol veya 6-shogaol varlığında belirgindi ve 6-shogaol varlığında daha belirgindi (Şekil​(Şekil4A).4A). Başka bir hif tahlili, hif oluşumunu destekleyen RPMI-1640 ortamı kullanılarak yapıldı (Kucharikova ve diğerleri, 2011 ). 24 saatlik inkübasyondan sonra, kontrol numunesinde çoğunlukla hifler ve hiflerle dolaşan büyük hücre agregasyonları gözlenirken, 6-gingerol veya 6-shogaol ile muamele, doza bağlı bir şekilde çok daha küçük hücre agregasyonları ile sonuçlandı (Şekil​(Şekil4B).4B). Ayrıca, hifal ve hücre agregasyonu sonuçları, 6-gingerol ve 6-shogaol'ün gözlemlenen antibiyofilm aktiviteleri ile aynı çizgideydi. Birlikte ele alındığında, bu sonuçlar 6-gingerol ve 6-shogaol'ün hifal oluşumunu ve hücre agregasyonunu güçlü bir şekilde inhibe ettiğini gösterir ve dolayısıyla bu iki ajanın C. albicans tarafından biyofilm oluşumunu azalttığını gösterir .
              Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı fcimb-08-00299-g0004.jpg'dir.
              Şekil 4
              Sıvı ortamda 6-gingerol ve 6-shogaol tarafından hifal filamentasyonu ve agregasyonun inhibisyonu. PDB ortamında (A) ve RPMI ortamında (B) hifal filamentasyonun inhibisyonları . C. albicans hücreleri, 6-gingerol veya 6-shogaol varlığında veya yokluğunda PDB ortamında veya RPMI-1640 ortamında 24 saat büyütüldü. Hyphae, 24 saat inkübasyondan sonra görselleştirildi. Ölçek çubuğu 200 μm'yi temsil eder. Hiçbiri; işlenmemiş kontrol 6-Gingerol ve 6-Shogaol ile diferansiyel gen ifadeleri

              6-gingerol veya 6-shogaol'ün biyofilm oluşumu ve hif büyümesi üzerindeki etkilerinin moleküler temelleri, RNA-seq ve qRT-PCR ile araştırıldı. RNA-seq ilk önce işlenmemiş numune ve işlenmiş numunelerdeki diferansiyel gen ifadelerini belirlemek için kullanıldı. En az 2 kat diferansiyel olarak eksprese edilen genler seçildi ve biyofilm ve hipha ile ilgili genler veya virülans ile ilgili genler dahil olmak üzere dört fonksiyonel kategoriye ayrıldı (Ek Tablo S1). Genel olarak ekspresyon eğilimleri, 50 μg/ml'de 6-gingerol veya 10 μg/ml'de 6-shogaol ile tedaviden sonra benzerdi. Bununla birlikte, kullanılan konsantrasyonlar göz önüne alındığında, 6-shogaol açıkça 6-gingerol'den daha büyük bir etkiye sahipti. 6-gingerol eklenmesi, 125 genin ifadesini 2 kattan fazla önemli ölçüde değiştirdi; 37 gen yukarı regüle edildi ve 88 gen aşağı regüle edildi. Benzer şekilde, 6-shogaol eklenmesi 78 genin ifadesini önemli ölçüde değiştirmiştir; 29 gen yukarı regüle edildi ve 49 gen aşağı regüle edildi.

              Özellikle, bu ifade değişiklikleri, çeşitli biyofilm ve hif ile ilişkili genleri içermiştir (Ek Tablo S1 ). Spesifik olarak, HWP1 ( ECE2 olarak da bilinen hifal hücre duvarı proteini ) ve ECE1 (hifaya özgü protein), 6-gingerol veya 6-shogaol tarafından sırasıyla 7 ve 2 kattan fazla bastırıldı ve CDR1 ve CDR2 ( çoklu ilaç ) taşıyıcı) ve RTA3(lipid translokasyon yapan ihracatçı), 6-gingerol veya 6-shogaol tarafından 4 kattan fazla yukarı regüle edilmiştir. qRT-PCR, 6-gingerol ve 6-shogaol RNA-seq deneylerinde oldukça diferansiyel olarak eksprese edilen lokusların gen ekspresyon değişikliklerini doğrulamak için kullanıldı. Seçilen 15 gen için qRT-PCR, ekspresyonda genellikle RNA-seq testi sonuçlarıyla uyumlu farklı değişiklikler gösterdi (Şekil​(Şekil5).5). 6-shogaol deneyi için, RNA-seq ve qRT-PCR, genlerin benzer boyutlarda bastırıldığını gösterdi, yani CDR1 için 10-kat - 20-kat, CHT2 için 3-kat - 2-kat , 12-kat vs. HWP1 için 9 kat , sırasıyla 6 kat ve RTA3 için 9 kat . Benzer şekilde 6-gingerol, HWP1 ve CHT2'nin ekspresyonunu aşağı regüle etti ve CDR1 ve RTA3'ü yukarı regüle etti . Bununla birlikte, diğer biyofilm ve hiflerle ilgili genlerin ( ALS1, ALS3, EFG1, HYR, PDR16, RBT1, SNQ2, TEC1 ve UME6) ifadeleri) 6-gingerol veya 6-shogaol'den etkilenmemiştir. Birlikte ele alındığında, RNA-seq ve qRT-PCR sonuçları, 6-gingerol ve 6-shogaol'ün bazı hifaya özgü ( HWP1 ve ECE1 ), biyofilmle ilgili ( HWP1 ve RTA3 ) ve çoklu ilaç taşıyıcının ( CDR1 ve CDR2 ) ifadelerini önemli ölçüde değiştirdiğini gösterdi. ) ilgili genler.
              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: fcimb-08-00299-g0005.jpg
              Şekil 5
              6-gingerol veya 6-shogaol ile veya bunlar olmadan tedavi edilen C. albicans hücrelerinin transkripsiyonel profilleri . C. albicans, 250 rpm'de çalkalanarak 4 saat boyunca 50 μg/ml'de 6-gingerol veya 10 μg/ml'de 6-shogaol ile veya bunlar olmadan yetiştirildi. Transkripsiyonel profiller, qRT-PCR ile elde edildi. Katlama değişiklikleri, işlenmiş ve işlenmemiş C. albicans'ın transkripsiyonlarındaki değişiklikleri temsil eder . Deney iki kopya halinde gerçekleştirildi (gen başına altı qRT-PCR reaksiyonu gerçekleştirildi). * P < 0.05'e karşı . işlenmemiş kontroller (Yok). 6-Gingerol ve 6-Shogaol, C. albicans ile enfekte nematodları kurtardı

              Memeli modellerine alternatif olarak kabul edilen bir Caenorhabditis elegans nematod modelinde 6-gingerol veya 6-shogaol'ün C. albicans virülansını etkileyip etkilemediğini inceledik (Tampakakis ve diğerleri, 2008 ). C. albicans enfeksiyonu 4 günde %45 C. elegans ölümüne neden oldu. Bununla birlikte, nematodların > %80'i 50 μg/ml'de 6-gingerol veya 6-shogaol varlığında hayatta kaldı (Şekiller6A,B). 6-gingerol ve 6-shogaol'ün kimyasal toksisitelerini araştırmak için, enfekte olmayan nematodlar iki ajanın farklı konsantrasyonlarına maruz bırakıldı. 500 μg/ml'ye kadar olan konsantrasyonlarda 6-gingerol ve 6-shogaol'ün C. elegans için toksik olmadığını bulduk (Şekil​(Şekil6C).6C). Bu sonuçlar, hem 6-gingerol hem de 6-shogaol'ün enfekte nematodların hayatta kalmasını etkili bir şekilde desteklediğini ve bunların nematod üzerinde hiçbir toksik etkisinin olmadığını göstermektedir.
              Resim, çizim vb. tutan harici bir dosya. Nesne adı fcimb-08-00299-g0006.jpg'dir.
              Şekil 6
              6-gingerol ve 6-shogaol'ün C. albicans ile enfekte olmuş C. elegans üzerindeki etkileri . 6-gingerol (A) veya 6-shogaol (B) mevcudiyetinde 4 gün boyunca C. albicans'a maruz kaldıktan sonra nematod sağkalımı . 6-gingerol ve 6-shogaol'ün toksisiteleri, enfekte olmayan nematodların 4 gün süreyle muamele edilmesiyle belirlendi (C) . Hiçbiri, işlenmemiş kontrolleri gösterir. Solucanın hayatta kalması harekete göre belirlendi. * p < 0,05'e karşı . işlenmemiş kontroller.

              Git: Tartışma

              Mevcut çalışma, zencefil bileşenleri 6-gingerol ve 6-shogaol'ün , hif büyümesini ve hücre agregasyonunu inhibe ederek ve mantar virülansını azaltarak ilaca dirençli bir C. albicans suşu tarafından biyofilm oluşumunu azalttığını ilk kez göstermektedir .

              Zencefil ( Zingiber officinale (L.) Rosc) 2000 yılı aşkın bir süredir baharat ve bitkisel ilaç olarak kullanılmaktadır. Kökleri ve ekstraktları, önemli ölçüde antioksidan aktiviteye sahip olan gingeroller, shogaoller, paradoller, zencefildioller ve zingeron gibi polifenol bileşikleri içerir (Si ve diğerleri, 2018 ) . Taze zencefil, ağırlıkça yaklaşık %4 oranında 6-gingerol içerir, ancak neredeyse hiç 6-shogaol içermez. Ancak 6-shogaol, kurutma işlemleri kullanılarak 6-gingerolün dehidre edilmesiyle kolayca üretilir (Chen ve diğerleri, 1986 ; Jolad ve diğerleri, 2004 ). 6-Gingerol ve 6-shogaol'ün metabolik sendrom, kardiyovasküler hastalık, demans, artrit, diyabet, osteoporoz, kanserler ve bulaşıcı hastalıklar için etkili tedaviler olduğu bildirilmiştir (Ali ve ark., 2008) .; Kim ve diğerleri, 2010 ). Gingerollerin ve shogaollerin antibakteriyel aktiviteleri de incelenmiştir (Park ve diğerleri, 2008 ). Daha yakın zamanlarda, 6-gingerol (Kim ve diğerleri, 2015 ) ve 6- ve 8-gingerol analoglarının (Choi ve diğerleri, 2017 ) P. aeruginosa'ya karşı antibiyofilm aktiviteleri rapor edilmiştir. İlginç bir şekilde 6-gingerol , planktonik hücre büyümesini etkilemeden hem P. aeruginosa (Kim ve diğerleri, 2015 ) (Choi ve diğerleri, 2017 ) hem de C. albicans'ın biyofilm oluşumunu inhibe etti ve hiçbir kimyasal toksisite göstermedi. 6-Gingerol analogları dahil olmak üzere P. aeruginosa'da çekirdek algılama sistemine müdahale eder., 6-gingerol ve 6-shogaol ise bu çalışmada hifal büyümesini baskıladı.

              Bu çalışmada incelenen altı gingerol ve shogaol bileşiğinden en etkili şekilde 6-gingerol ve 6-shogaol C. albicans biyofilm oluşumunu azalttı (Şekil​(Şekil 1)1) ve 6-shogaol, biyofilm oluşumunu, hif büyümesini, hücre agregasyonunu ve mantar virülansını en çok inhibe etti (Şekiller1–5). 6-shogaol'ün biyolojik potensinin 6-gingerol'den daha büyük olduğu birkaç kez bildirilmiştir ve ilginç bir şekilde bu bileşikler, 6-gingerol'de bir hidroksil parçasının varlığı ve karbon yan zincirinde çift bağ ile yapısal olarak farklılık gösterir. 6-shogaol (Rakamlar1A,D). Bu hidroksil parçasının varlığının proinflamatuar gen aktivasyonunu önemli ölçüde etkilediği daha önce bildirilmiştir (Isa ve diğerleri, 2008 ). Ayrıca, 6-shogaol'ün 6-gingerol'den çok daha güçlü bir anti-tümörijenik etkiye sahip olduğu bildirilmiştir (Wu ve diğerleri, 2010 ). Önceki çalışmalar, a,b-doymamış karbonillerin, in vivo olarak en bol protein olmayan tiyol olan glutatyon gibi tiyollerle nükleofilik katılma reaksiyonlarına duyarlı olduğunu öne sürmüştür (Boyland ve Chasseaud, 1968 ). Bu çalışmada yürütülen transkriptomik analiz, 50 μg/ml'de 6-gingerol'ün global gen ekspresyonunda 10 μg/ml'de 6-shogaol tarafından indüklenenlere benzer değişikliklerle sonuçlandığını gösterdi (Şekil​(Şekil5),5), bu, 6-gingerol ve 6-shogaol'ün transkripsiyonel düzeyde etki ettiğini gösterir. 6-gingerol ve 6-shogaol arasındaki yapısal farkın, bunların hipha sinyal yolundaki hif düzenleyici genlerin ifadelerini etkileme yeteneklerini etkilediğini öne sürüyoruz. Ayrıca, 8-gingerolün antibiyofilm ve antihifa aktivitelerini gözlemledik (Ek Şekiller S1 , S2 ) ve 8-gingerolün etki modu muhtemelen C. albicans'taki 6-gingerol ve 6-shogaol'ünkine benzer .

              Bu çalışmada, hiphaya özgü ve biyofilmle ilgili birkaç genin transkripsiyon seviyelerinin 6-gingerol ve 6-shogaol tarafından önemli ölçüde değiştirildiğini bulduk (Ek Tablo S1 ) . Gen ontoloji analizi, 6-ginerol ve 6-shogaol'ün, membran bileşenleri, taşıma proteinleri, patogenez, stres ve biyofilm oluşumunu içeren genlerin ekspresyonunu düzenlediğini gösterdi (Ek Şekil S3 ) . KEGG analizi, 6-ginerol ve 6-shogaol'ün benzer şekilde gliserofosfolipid, mayoz, ABC taşınması ve karbon metabolizması gibi çeşitli metabolizmalarla ilişkili olduğunu gösterdi (Ek Şekil S4 ). En belirgin şekilde, HWP1 ve ECE1 aşağı regüle edildi ve ECE1hifal gelişimi için gereklidir ve ekspresyonunun hücre uzaması ve biyofilm oluşumu ile ilişkili olduğu gösterilmiştir (Nobile ve diğerleri, 2006a ). 6-gingerol veya 6-shogaol tarafından HWP1 ve ECE1'in aşağı regülasyonları, biyofilm oluşumu ve hif gelişimi üzerindeki gözlemlenen etkileriyle tutarlıdır. HWP1, hif gelişimi (Nobile ve diğerleri, 2006b ) ve hücreler arası yapışma (Orsi ve diğerleri, 2014 ) için gerekli olan bir hifal duvar proteinini kodlar . Daha önce sedir yaprağı yağından kafur ve fenkil alkol (Manoharan ve ark., 2017b ) ve madder cinsinin köklerinden alizarin (Manoharan ve ark., 2017a) olduğunu bildirmiştik.) HWP1 ve ECE1'in gen ifadelerini baskılayarak hifal oluşumunu azaltarak C. albicans biyofilm oluşumunu inhibe eder . Bu nedenle, bitkiler aleminde hif oluşumunu azaltma yeteneğinin nadir olmadığı ve bunun C. albicans tarafından biyofilm oluşumunu engellemenin pratik bir yolunu sunduğu görülmektedir .

              Öte yandan, hem 6-gingerol hem de 6-shogaol, CDR1 ( Candida ilaç direnci, çoklu ilaç taşıyıcı) ve RTA3 (lipit translokasyon ihracatçısı) ekspresyonlarını yaklaşık 10 kat artırdı. CDR1 önemli bir ABC taşıyıcısıdır ve önceki bir çalışmada, CDR1 mRNA seviyelerinin C. albicans izolatlarında azol direncindeki bir artışla pozitif korelasyon gösterdiği ve biyofilm oluşumu sırasında yukarı regüle edildiği bulunmuştur (White, 1997 ). Ramage ve ark. CDR1 mutantının, planktonik olarak büyürken flukonazole karşı oldukça duyarlı olduğunu, ancak biyofilm büyümesi sırasında dirençli fenotipi koruduğunu bildirmiştir (Ramage ve diğerleri, 2002 ) .). Öte yandan, RTA3 geni, Rta1 p-benzeri lipit yer değiştiren ihracatçıyı kodlar ve ekspresyonunun, CDR1 ekspresyonu ile pozitif ilişkili olduğu bulundu (Whaley ve diğerleri, 2016 ). Bu nedenle, C. albicans'ın 6-gingerol ve 6-shogaol'ü dışarı pompalamaya çalışması olasıdır , bu da azol antifungal ajan(lar)ı ve 6-gingerol veya 6-shogaol birlikte uygulandığında C. albicans'ta azol direncini artırabilir. .

              Çoklu ilaca dirençli Candida suşlarının ortaya çıkışı , alternatif antifungal ajanlar üzerindeki araştırmaları yönlendirdi ve antivirülans ve antibiyofilm ajanlar, araştırmaların büyük ilgisini çekti. Bu çalışma, 6-gingerol ve 6-shogaol'ün flukonazole dirençli C. albicans DAY185 üzerindeki antibiyofilm etkilerinin, mantar büyümesinin inhibisyonundan değil, maya-hipal geçişinin önlenmesinden kaynaklandığını göstermektedir. Ayrıca 6-gingerol ve 6-shogaol, kullanılan koşullar altında minimum kimyasal toksisite ile bir Caenorhabditis elegans modelinde C. albicans virülansını etkili bir şekilde azalttı. Sonuç olarak, 6-gingerol ve 6-shogaol, ilaca dirençli bir bakteriye karşı antibiyofilm ve antivirülans aktivitelere sahiptir.C. albicans .

              Git: Yazar Katkıları

              J-HL, Y-GK, JGP ve JL araştırma tasarladı, deneyler yaptı ve verileri analiz etti. PC, JH ve JGP malzemeleri sağladı. J-HL ve JL taslağı yazdı. Tüm yazarlar son makaleyi okudu ve onayladı. çıkar çatışması beyanı

              Yazarlar, araştırmanın potansiyel bir çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişki olmaksızın yürütüldüğünü beyan eder.

              Git: teşekkürler

              Bu araştırma, Milli Eğitim Bakanlığı tarafından finanse edilen NRF aracılığıyla Temel Bilim Araştırma Programı (J-HL için 2018R1D1A3B07040699 ve JL için 2018R1D1A1B07044288) ve Milli Eğitim Bakanlığı tarafından finanse edilen NRF aracılığıyla Öncelikli Araştırma Merkezleri Programı (2014R1A6A1031189) tarafından desteklenmiştir. .


              Git: Ek materyal

              Bu makale için Ek Materyal çevrimiçi olarak şu adreste bulunabilir: https://www.frontiersin.org/articles...ntary-material
              Ek veri dosyası için buraya tıklayın. (29M, belge)
              Git: Referanslar

              • Ali BH, Blunden G., Tanıra MO, Nemmar A. (2008). Zencefilin ( Zingiber officinale Roscoe) bazı fitokimyasal, farmakolojik ve toksikolojik özellikleri: son araştırmaların gözden geçirilmesi . Gıda Kimyası toksikol _ 46 , 409–420. 10.1016/j.fct.2007.09.085 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Amin-ül Mannan M., Sharma S., Ganesan K. (2009). İnatçı maya hücrelerinden toplam RNA izolasyonu . Anal. biyokimya _ 389 , 77–79. 10.1016/j.ab.2009.03.014 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Boyland E., Chasseaud LF (1968). Glutatyonun alfa-beta-doymamış karbonil bileşikleri ile konjugasyonlarını katalize eden enzimler . biyokimya J. _ 109 , 651–661. 10.1042/bj1090651 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Carradori S., Chimenti P., Fazzari M., Granese A., Angiolella L. (2016). Candida spp'ye karşı Crocus sativus türevli bileşiklerin antimikrobiyal aktivitesi, sinerjizmi ve germ tüpü oluşumunun inhibisyonu . J. Enzim Engelleme. Med. kimya _ 31 , 189–193. 10.1080/14756366.2016.1180596 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Chandra J., Kuhn DM, Mukherjee PK, Hoyer LL, McCormick T., Ghannoum MA (2001). Mantar patojeni Candida albicans tarafından biyofilm oluşumu : geliştirme, mimari ve ilaç direnci . J. Bakteriol . 183 , 5385–5394. 10.1128/JB.183.18.5385-5394.2001 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Chen C.-C., Rosen RT, Ho C.-T. (1986). Zencefilin ( zingiber officinale roscoe) izole edilmiş gingerol bileşiklerinden türetilen izomerik shogaol bileşiklerinin kromatografik analizleri . J. Kromatr. A 360 , 175–184. 10.1016/S0021-9673(00)91660-1 [ CrossRef ] [ Google Akademik ]
              • Choi H., Ham SY, Cha E., Shin Y., Kim HS, Bang JK, et al.. (2017). Anti-biyofilm ajanları olarak 6- ve 8-gingerol analoglarının yapı-aktivite ilişkileri . J.Med. kimya _ 60 , 9821–9837. 10.1021/acs.jmedchem.7b01426 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Gentleman RC, Carey VJ, Bates DM, Bolstad B., Dettling M., Dudoit S., et al.. (2004). Bioconductor: hesaplamalı biyoloji ve biyoinformatik için açık yazılım geliştirme . Genom Biol . 5 :R80. 10.1186/gb-2004-5-10-r80 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Heydorn A., Nielsen AT, Hentzer M., Sternberg C., Givskov M., Ersboll BK, et al.. (2000). Yeni bilgisayar programı COMSTAT ile biyofilm yapılarının ölçülmesi . Mikrobiyoloji 146 , 2395–2407. 10.1099/00221287-146-10-2395 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Isa Y., Miyakawa Y., Yanagisawa M., Goto T., Kang MS, Kawada T., ve diğerleri.. (2008). 6-Shogaol ve zencefilin keskin kokusu olan 6-gingerol, 3T3-L1 adipositlerinde farklı mekanizmalar yoluyla adiponektin ekspresyonunun TNF-alfa aracılı aşağı regülasyonunu inhibe eder . biyokimya biyografiler. Res. iletişim _ 373 , 429–434. 10.1016/j.bbrc.2008.06.046 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Jolad SD, Lantz RC, Solyom AM, Chen GJ, Bates RB, Timmermann BN (2004). Organik olarak yetiştirilen taze zencefil ( Zingiber officinale ): LPS kaynaklı PGE2 üretimi üzerindeki bileşim ve etkiler . Fitokimya 65 , 1937–1954. 10.1016/j.phytochem.2004.06.008 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Kiralla GM (2015). Zencefilin gıda ile ilgili bazı patojenlere karşı antibiyofilm ve yapışma önleyici etkileri. J. Gıda Arş . teknoloji _ 3 , 87–96. [ Google Akademik ]
              • Kim HS, Cha E., Kim Y., Jeon YH, Olson BH, Byun Y., ve diğerleri.. (2016a). Bir bitki galaktosit olan rafinoz, LecA'ya bağlanarak ve hücresel siklik diguanilat seviyelerini azaltarak Pseudomonas aeruginosa biyofilm oluşumunu inhibe eder . bilim temsilci _ 6 :25318. 10.1038/srep25318 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Kim HS, Lee SH, Byun Y., Park HD (2015). 6-Gingerol, çekirdek algılama inhibisyonu yoluyla Pseudomonas aeruginosa biyofilm oluşumunu ve virülansı azaltır . bilim temsilci _ 5 :8656. 10.1038/srep08656 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Kim HS, Park HD (2013). Zencefil özü, Pseudomonas aeruginosa PA14 tarafından biyofilm oluşumunu engeller . PLoS BİR 8 :e76106. 10.1371/journal.pone.0076106 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Kim MK, Chung SW, Kim DH, Kim JM, Lee EK, Kim JY ve diğerleri.. (2010). MAPK yolu yoluyla diyet zingerone ile yaşa bağlı NF-κB aktivasyonunun modülasyonu . Tecrübe. Gerontol . 45 , 419–426. 10.1016/j.exger.2010.03.005 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Kim Y.-G., Lee J.-H., Gwon G., Kim S.-I., Park JG, Lee J. (2016b). Uçucu yağlar ve öjenoller, biyofilm oluşumunu ve Escherichia coli O157:H7'nin virülansını engeller . bilim temsilci _ 6 :36377. 10.1038/srep36377 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Kucharikova S., Tournu H., Lagrou K., Van Dijck P., Bujdakova H. (2011). Farklı koşullar altında Candida albicans ve Candida glabrata biyofilmlerinin ve bunların kaspofungin ve anidulafungine duyarlılıklarının ayrıntılı karşılaştırması . J.Med. Mikrobiyoloji _ 60 , 1261–1269. 10.1099/jmm.0.032037-0 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Kumar L., Chhibber S., Harjai K. (2013). Zingerone, biyofilm oluşumunu inhibe eder ve siprofloksasinin Pseudomonas aeruginosa PAO1'e karşı antibiyofilm etkinliğini arttırır . Fitoterapi 90 , 73–78. 10.1016/j.fitote.2013.06.017 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Lee J.-H., Cho MH, Lee J. (2011). 3-İndolilasetonitril, Escherichia coli O157:H7 biyofilm oluşumunu ve Pseudomonas aeruginosa virülansını azaltır . çevre. Mikrobiyoloji _ 13 , 62–73. 10.1111/j.1462-2920.2010.02308.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Lee J.-H., Kim Y.-G., Ryu SY, Lee J. (2016). Kalsiyum şelatlayıcı alizarin ve diğer antrakinonlar, biyofilm oluşumunu ve Staphylococcus aureus'un hemolitik aktivitesini inhibe eder . bilim temsilci _ 6 :19267. 10.1038/srep19267 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Manoharan RK, Lee J.-H., Kim Y.-G., Lee J. (2017a). Alizarin ve chrysazin, Candida albicans tarafından biyofilm ve hif oluşumunu engeller . Ön. Hücre. bulaştırmak. Mikrobiyoloji _ 7 :447. 10.3389/fcimb.2017.00447 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Manoharan RK, Lee J.-H., Lee J. (2017b). Candida albicans'a karşı sedir yaprağı esansiyel yağı, kafur ve fenchone türevlerinin antibiyofilm ve antihiphal aktiviteleri . Ön. Mikrobiyoloji _ 8 :1476. 10.3389/fmicb.2017.01476 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Nascimento GGF, Locatelli J., Freitas PC, Silva GL (2000). Bitki özlerinin ve fitokimyasalların antibiyotiğe dirençli bakteriler üzerindeki antibakteriyel aktivitesi . Braz. J. Mikrobiyol . 31 , 247–256. 10.1590/S1517-83822000000400003 [ CrossRef ] [ Google Akademik ]
              • Nobile CJ, Andes DR, Nett JE, Smith FJ, Yue F., Phan QT ve diğerleri. (2006a). Bcr1'e bağlı adezinlerin C'deki kritik rolü . albicans biyofilm oluşumu in vitro ve in vivo. PLoS Hastalığı . 2:e63. 10.1371/journal.ppat.0020063 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Nobile CJ, Nett JE, Andes DR, Mitchell AP (2006b). Candida albicans adhesin Hwp1'in biyofilm oluşumundaki işlevi . ökaryot. Hücre 5 , 1604–1610. 10.1128/EC.00194-06 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Orsi CF, Borghi E., Colombari B., Neglia RG, Quaglino D., Ardizzoni A., et al.. (2014). Candida albicans hiphal duvar proteini 1 (HWP1) genotipinin biyofilm üretimi ve mikroglial hücrelere mantar duyarlılığı üzerindeki etkisi . Mikrob. Patog . 69–70 , 20–27. 10.1016/j.micpath.2014.03.003 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Park M., Bae J., Lee DS (2008). Zencefil köksapından izole edilen [10]-gingerol ve [12]-gingerol'ün periodontal bakterilere karşı antibakteriyel aktivitesi . fitoter. Res . 22 , 1446–1449. 10.1002/ptr.2473 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Quinlan AR, Salon IM (2010). BEDTools: genomik özellikleri karşılaştırmak için esnek bir yardımcı program paketi . Biyoinformatik 26 , 841–842. 10.1093/bioinformatics/btq033 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Ramage G., Bachmann S., Patterson TF, Wickes BL, Lopez-Ribot JL (2002). Candida albicans biyofilmlerinde flukonazol direnci ile ilgili olarak çoklu ilaç akış pompalarının araştırılması . J. Antimikrob. kimya annesi 49 , 973–980. 10.1093/jac/dkf049 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Ramage G., Saville SP, Thomas DP, Lopez-Ribot JL (2005). Candida biyofilmleri: bir güncelleme . ökaryot. Hücre 4 , 633. – 638. 10.1128/EC.4.4.633-638.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Sandai D., Tabana YM, Ouweini AE, Ayodeji IO (2016). Candida albicans biyofilmlerinin ilaçlara ve konakçı bağışıklık sistemine direnci . Jundishapur J. Mikrobiol . 9 :e37385. 10.5812/jjm.37385 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Sardi JC, Scorzoni L., Bernardi T., Fusco-Almeida AM, Mendes Giannini MJ (2013). Candida türleri: mevcut epidemiyoloji, patojenite, biyofilm oluşumu, doğal antifungal ürünler ve yeni terapötik seçenekler . J.Med. Mikrobiyoloji _ 62 , 10–24. 10.1099/jmm.0.045054-0 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Si WH, Chen YP, Zhang JH, Chen ZY, Chung HY (2018). Zencefil özütünün ve bileşenlerinin lipitlere karşı antioksidan aktiviteleri . Gıda Kimyası 239 , 1117–1125. 10.1016/j.foodchem.2017.07.055 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Taff HT, Mitchell KF, Edward JA, Andes DR (2013). Candida biyofilm ilaç direncinin mekanizmaları . Geleceğin Mikrobiyolu . 8 , 1325–1337. 10.2217/fmb.13.101 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Tampakakis E., Okoli I., Mylonakis E. (2008). Antifungal bileşiklerin tanımlanması için bir C. elegans tabanlı, bütün hayvan, in vivo tarama . Nat. Protokol _ 3 , 1925–1931. 10.1038/nprot.2008.193 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Tobudic S., Lassnigg A., Kratzer C., Graninger W., Presterl E. (2010). Amfoterisin B, kaspofungin ve posakonazolün orta ve olgun gelişim evrelerinde Candida albicans biyofilmleri üzerindeki antifungal aktivitesi . Mikozlar 53 , 208–214. 10.1111/j.1439-0507.2009.01690.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Trapnell C., Pachter L., Salzberg SL (2009). TopHat: RNA-Seq ile ekleme bağlantılarını keşfetme . Biyoinformatik 25 , 1105–1111. 10.1093/bioinformatics/btp120 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Whaley SG, Tsao S., Weber S., Zhang Q., Barker KS, Raymond M., et al.. (2016). Varsayılan bir lipid translokazını kodlayan RTA3 geni, Candida albicans'ın flukonazole duyarlılığını etkiler . Antimikrob. Ajanlar Chemother . 60 , 6060–6066. 10.1128/AAC.00732-16 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Beyaz TC (1997). Artan ERG16, CDR ve MDR1 mRNA seviyeleri , insan immün yetmezlik virüsü ile enfekte olmuş bir hastadan alınan Candida albicans izolatlarında azol direncindeki artışlarla ilişkilidir . Antimikrob . Ajanlar Chemother . 41 , 1482–1487. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
              • Wu H., Hsieh MC, Lo CY, Bin Liu C., Sang SM, Ho CT, ve diğerleri.. (2010). 6-Shogaol, farelerde 12-O-tetradekanoilforbol 13-asetat kaynaklı tümör gelişimini inhibe etmede 6-gingerol ve kurkuminden daha etkilidir . Mol. Nutr. Gıda Arş . 54 , 1296–1306. 10.1002/mnfr.200900409 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Zelante T., Iannitti RG, De Luca A., Arroyo J., Blanco N., Servillo G., ve diğerleri. (2012). Memeli IL-17A'nın algılanması, mantar adaptasyonunu ve virülansı düzenler . Nat. iletişim _ 3 :683. 10.1038/ncomms1685 [ PubMed ] [ CrossRef ] [ Google Akademik ]

              Yorum yap


              • #8
                ZENCEFİL (Ginger) ile KİNETOZİS (Seyahat Hastalığı), Kusma ve Bulantı Hastalıklarının Tedavisi


                Zencefil; KİNETOZİS (Seyahat Hastalığı), Kusma, Bulantı gibi Rahatsızlıklar için En Etkili Bitkidir


                Baş Dönmesi, Bulantı, Kusma gibi Rahatsızlıklar ve Taşıt Tutması (Hareket Hastalığı) için ZENCEFİL

                Konu ozgurcay tarafından (https://bitkiara.com/vb5/member/18435-ozgurcay Saat 05 June 2023, 16:17 ) değiştirilmiştir.

                Yorum yap

                Hazırlanıyor...
                X