Duyuru

Collapse
No announcement yet.

Yaban Mersini Forte

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Yaban Mersini Forte

    YABAN MERSİNİ

    Funda | 0,2-0,6m | 5-7 Aylar | Yaprak ve Meyvesi

    Yaban mersini, Heidelbeere, Vaccinium myrtillus
    Çoban üzümü
    Yayla liforu
    Mavi üzüm
    Mavi yaban mersini
    Kuş üzümü
    Göz üzümü

    Familyası: Fundagillerden, Heidegewâchse, Ericaceae

    Drugları: Yaban mersini meyvesi; Myrtilli fructus
    Yaban mersini yaprağı; Myrtilli folia
    Yaban mersini meyvesi kurutulduktan sonra çayı, şurubu ve natürel ilacı, yapraklarının ise çayı ve natürel ilacı yapılır.

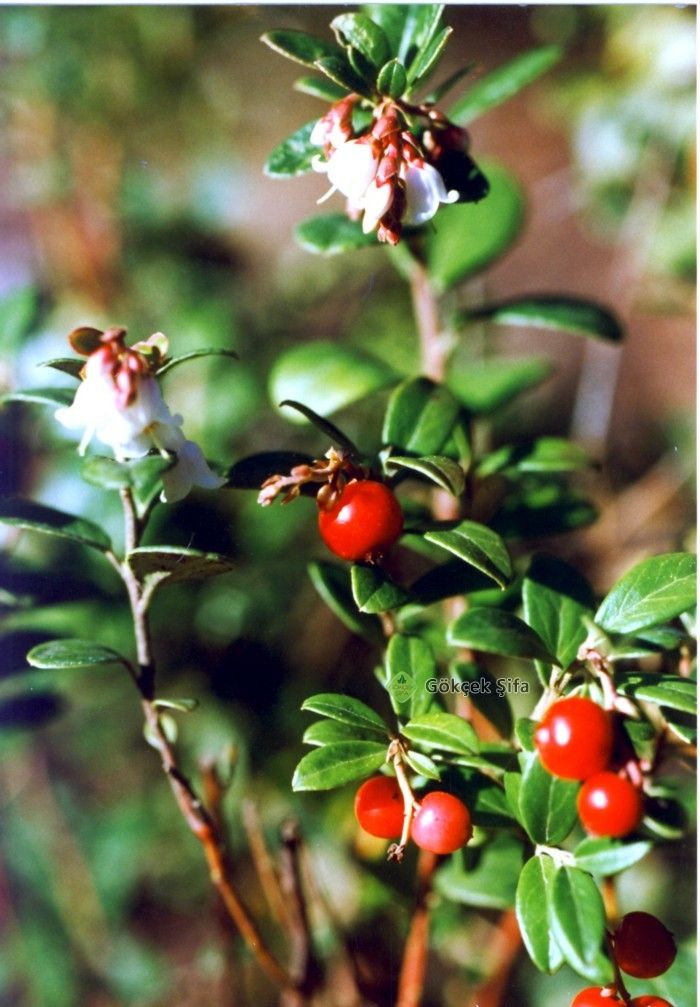
    Giriş: Yaban mersini fundagillerin alt grubu olan Vaccinioideaegillerden (yabanmersinigillerden) olup takriben 500 türü mevcuttur ve bunlardan en yaygın olarak kullanılan ve bilinen tür Çoban üzümü; Vaccinium myrtillus olup bunun haricinde Kırmızı yaban mersini; Vaccinium sitis-idea ve Karga üzümü; Vaccinium uliginosum’u sayabiliriz. Yaban mersini, çoban üzümü, mavi yaban mersini, kuş üzümü, yayla foru ve göz üzümü gibi isimlerle anılırlar. Bataklık yaban mersini zehirli olup pek kullanılmaz. Kırmızı yaban mersini ise idrar yolları rahatsızlıklarına karşı kullanılır. Yaban mersini meyvesi 16.yy.da LONİCERU tarafından böbrek ve mesane rahatsızlıklarına ve 1742’de WEINMANN tarafından ishal ve dizanteriye (kanlı ishal) karşı kullanılmış son yapılan modern klinik araştırmalarda da göz rahatsızlıklarına karşı etkili olduğu tespit edilmiştir. Yaban mersini ile mersinin herhangi bir yakınlığı yoktur. Sadece isim benzerliği söz konusudur. Ayrıca yaban mersini ve kırmızı yaban mersini ayı üzümü ile sık sık karıştırılmaktadır. Bu bitkilerinde çiçekleri birbirine benzer, fakat kullanılış alanları farklıdır.

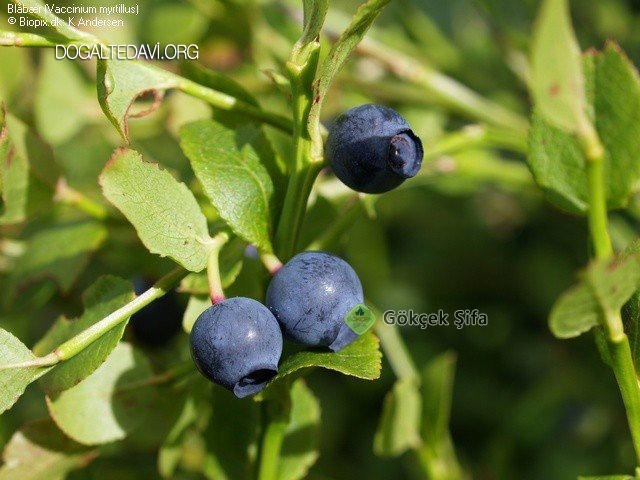
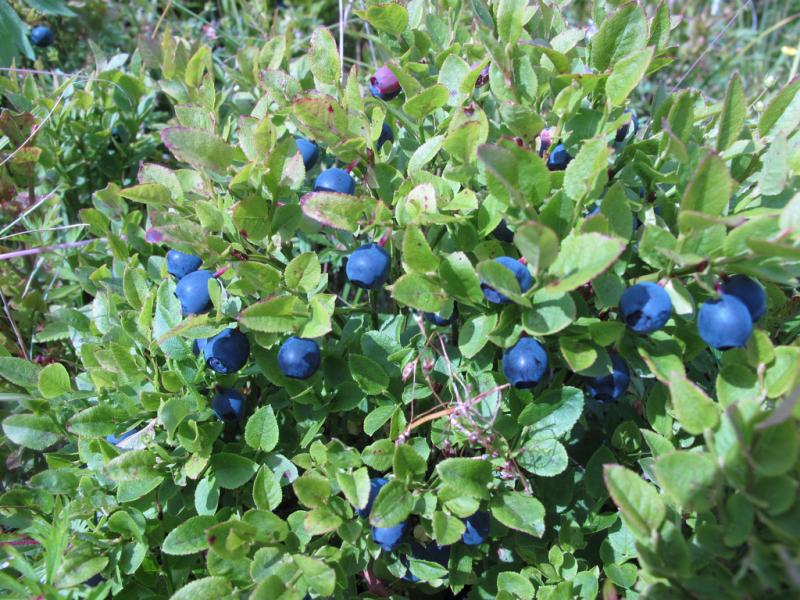
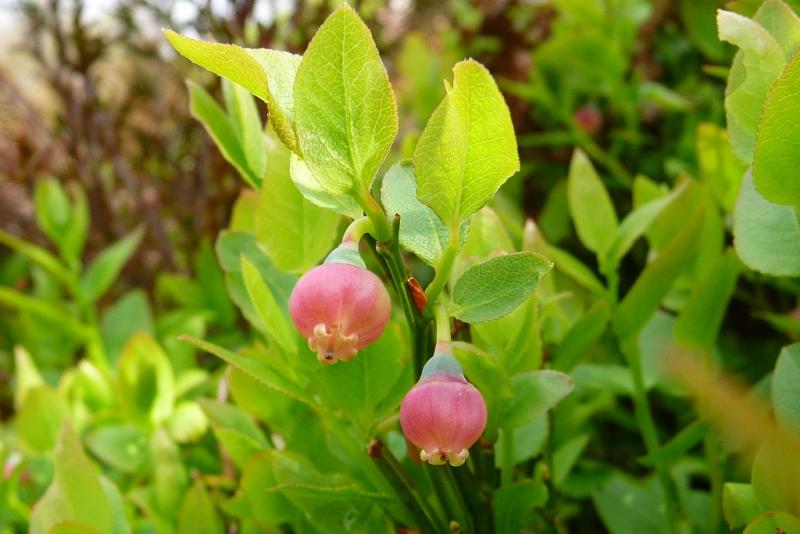
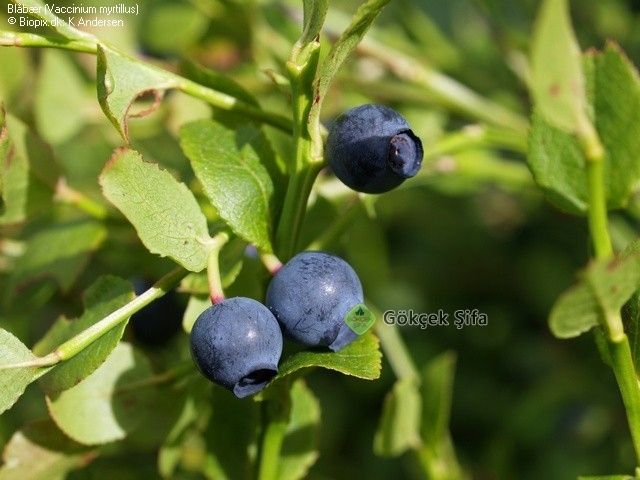
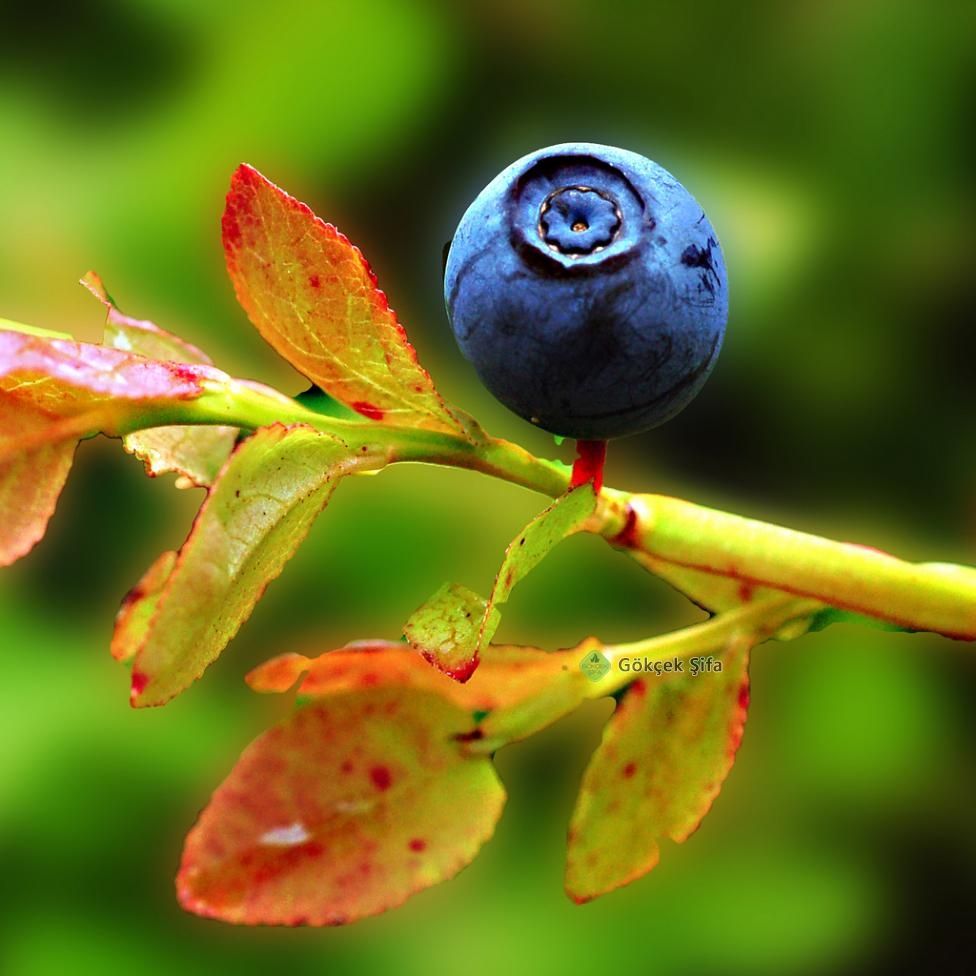
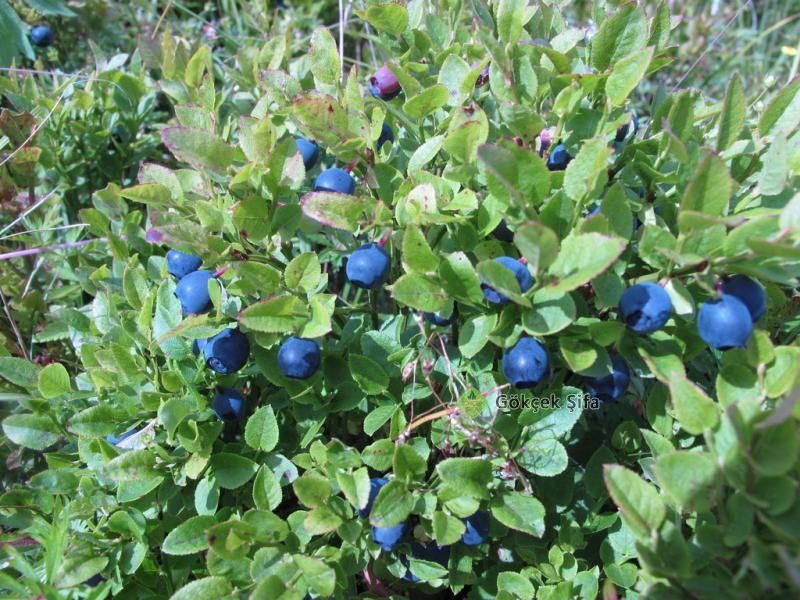
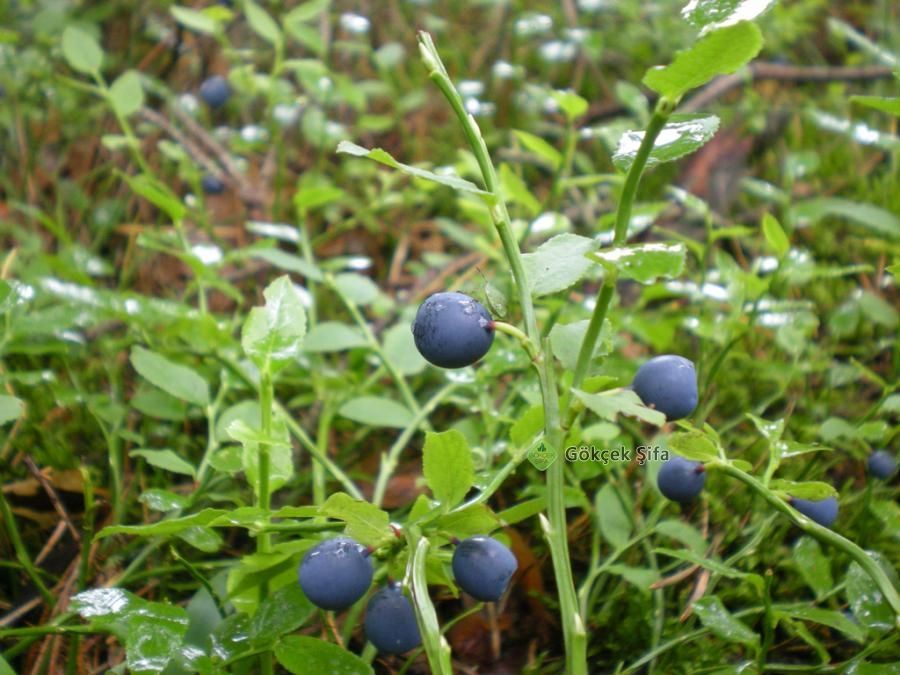
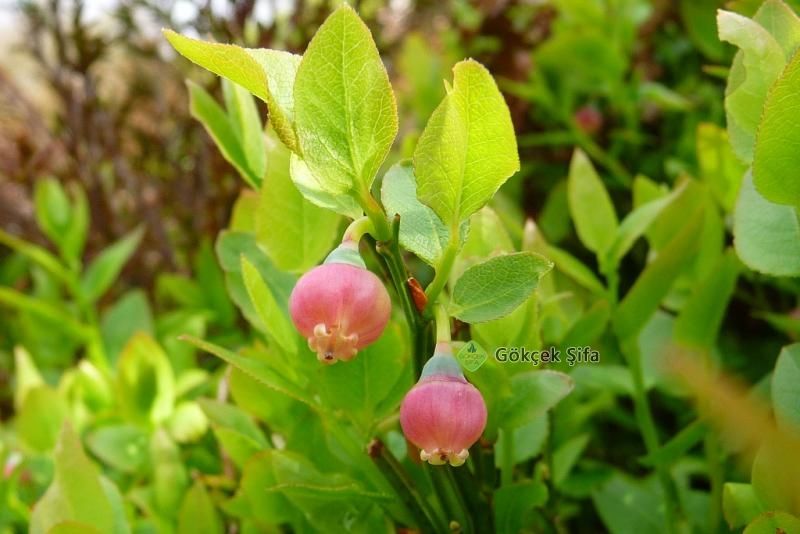
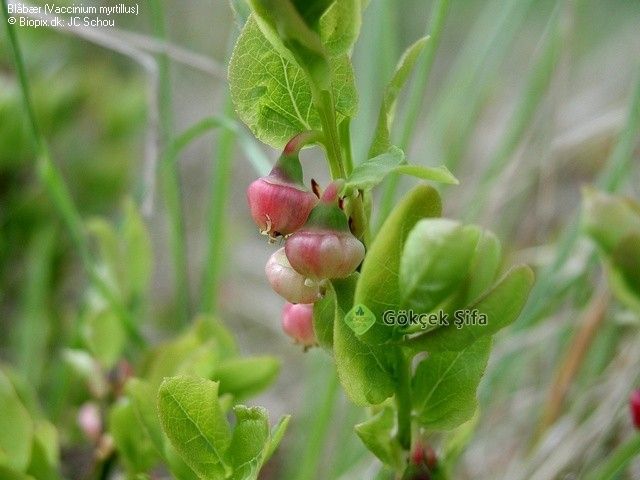
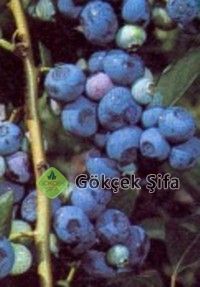
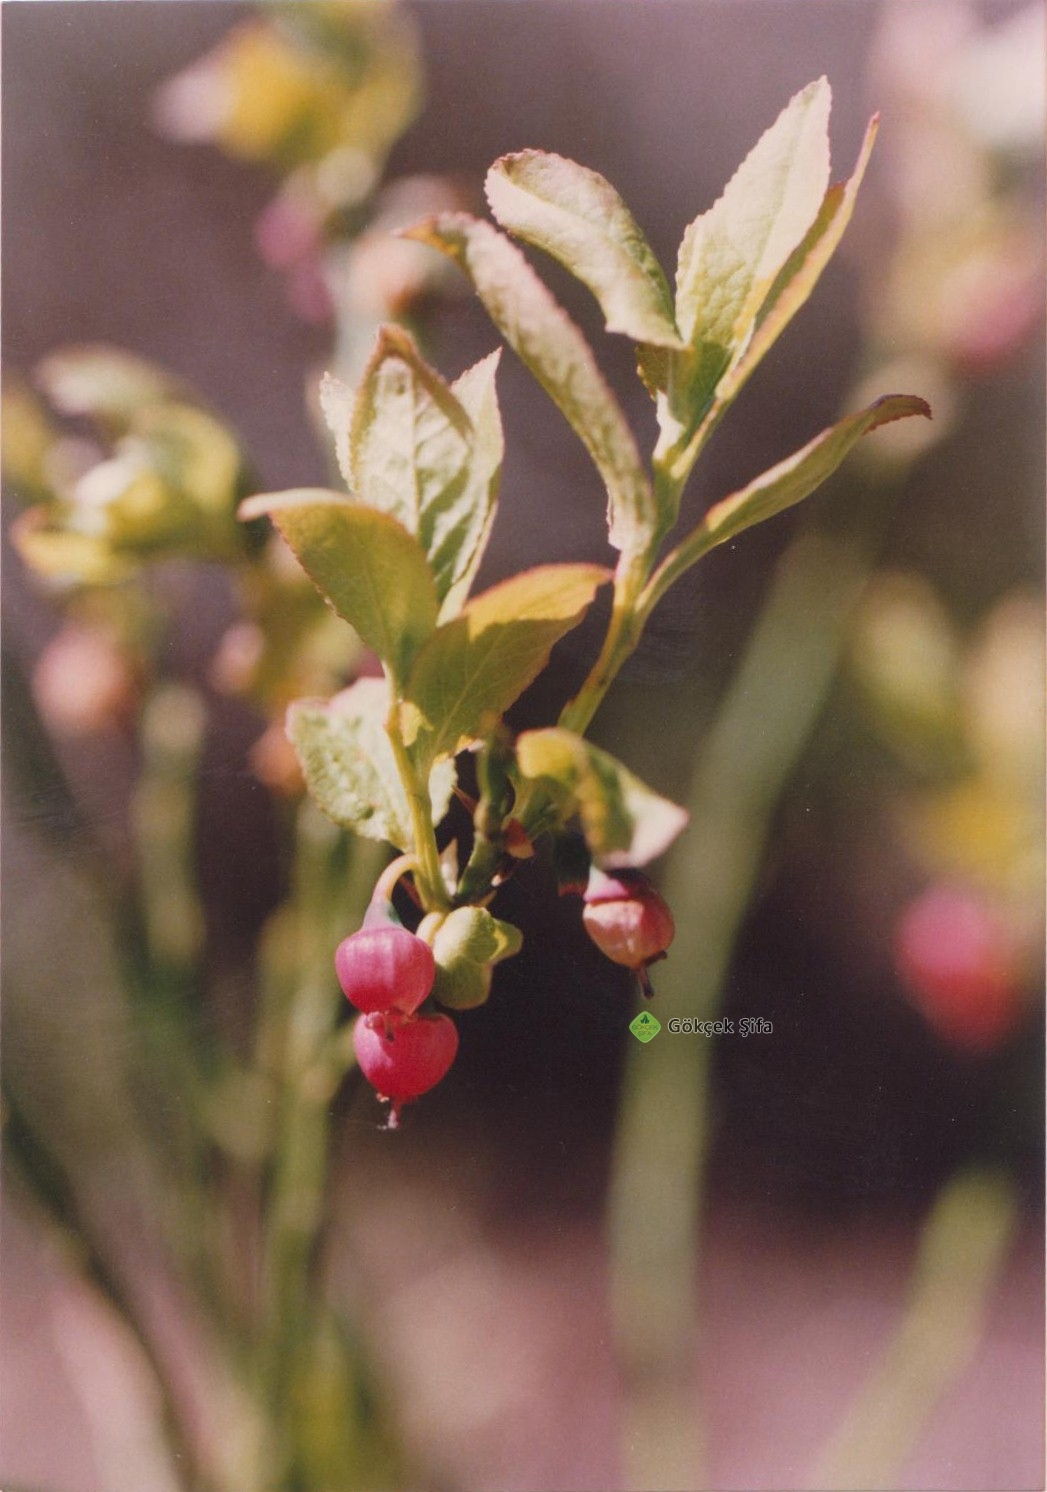
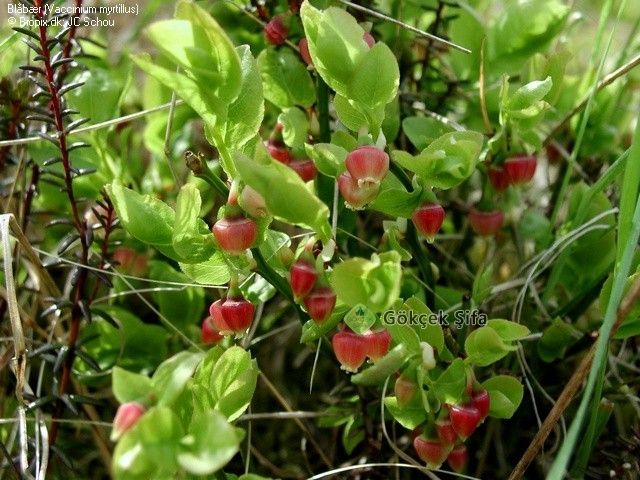
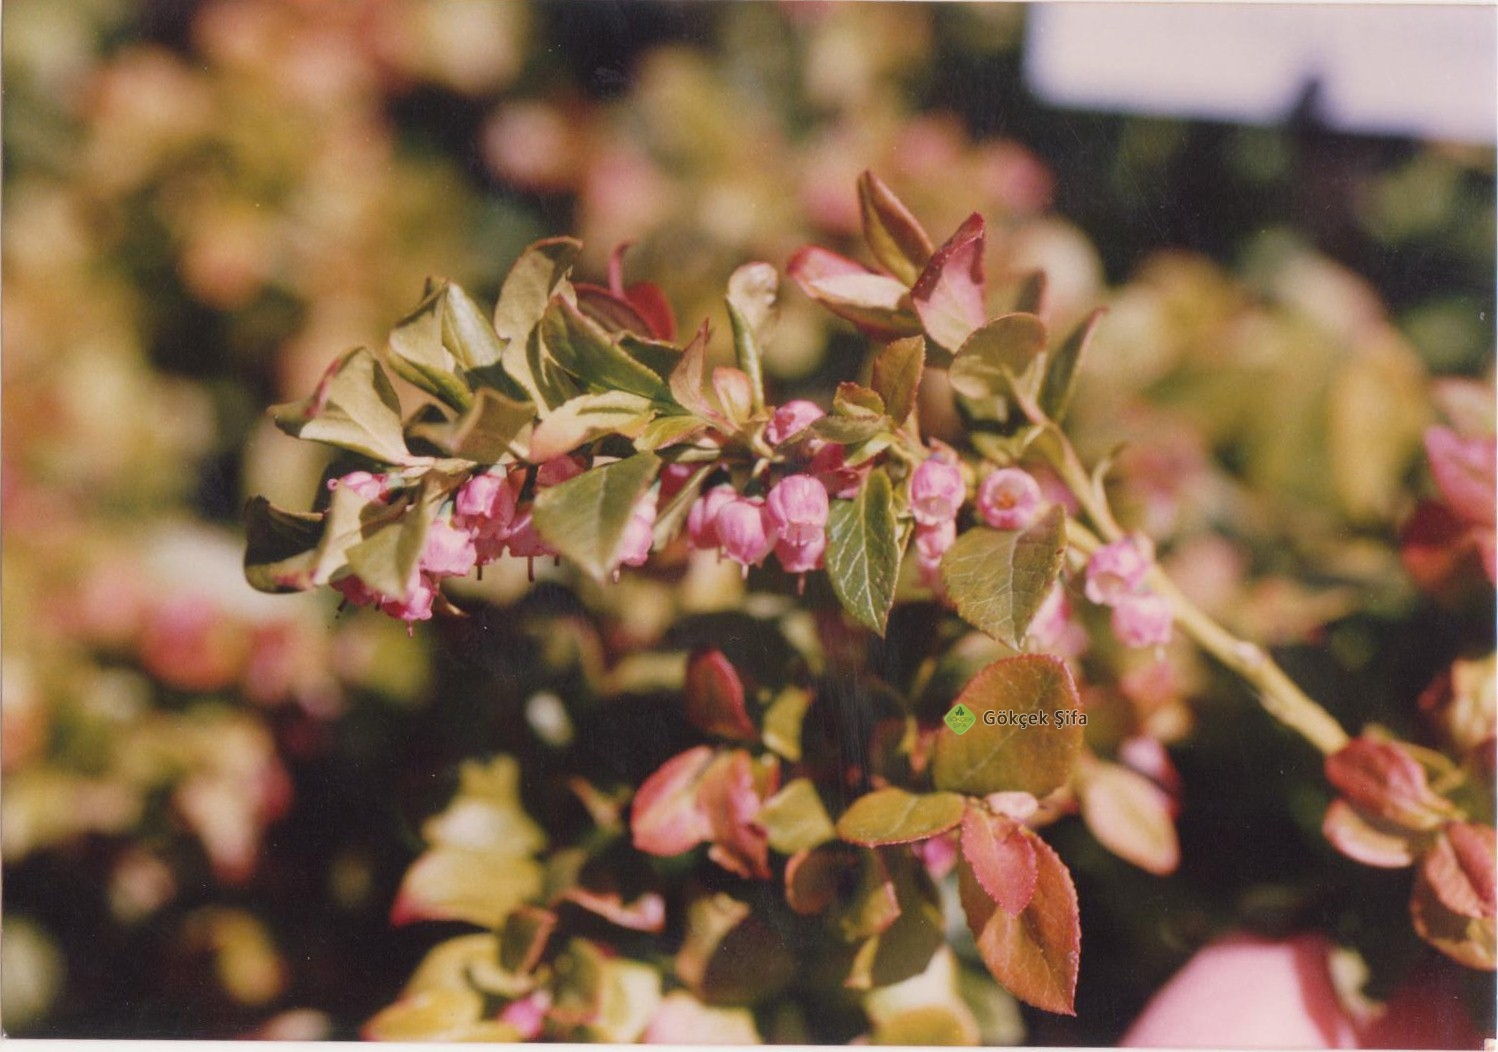
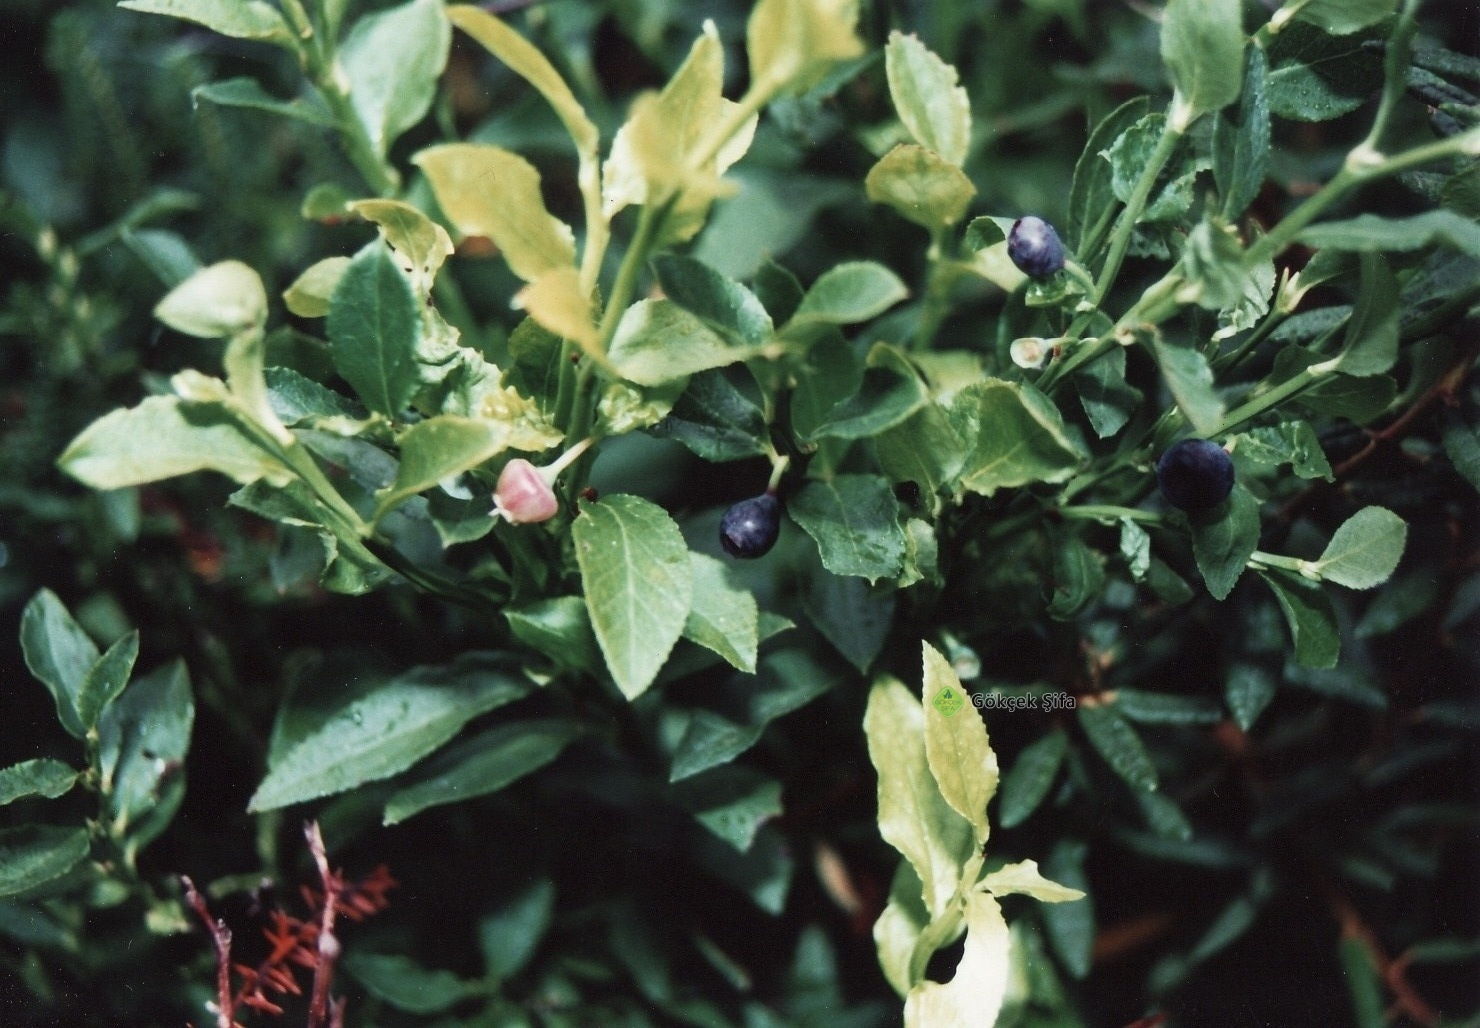
    Botanik: Yaban mersini 20-60cm boyunda sık çatallaşan, kökleri ile bulunduğu yerde yayılan ve kümeler oluşturan bir fundadır. Yaprakları 2-4cm uzunluğunda, 1-3cm eninde oval veya yumurta şeklinde, kısa saplı, kenarları narin kertikli ve açık sarımsı yeşil renklidir. Çiçekleri çan veya küre şeklinde, yaprak diplerinden çıkan kısa bir sapla sarkık olarak bulu-nur ve pembe, kırmızı, yeşilimsi pembe, ortada 8-10 adet döllenme toz-lukları vardır. Küre şeklindeki çiçeklerin ucunda beş küçük parça geri doğru dönük olarak bulunur. Meyveleri önce yeşil, sonra kırmızı ve niha-yet olgunlaşınca siyahımsı mavi bir renk alır, takriben nohut büyüklü-ğünde, küre şeklinde ve çok tohumludur.

    Yetiştirilmesi: Türkiye’nin Karadeniz ve Marmara bölgesindeki ormanlar-da yabani olarak yetişen bitki, bahçe ve tarlalarda yetiştirmek müm-kündür. Şayet göl, gölet, ırmak kenarları ve nemli yerlere ekilirse özel bir bakıma gerek kalmadan kendi kendine yetişebilir.

    Hasat zamanı: Meyveleri hazirandan eylüle kadar toplanır ve kurutulur, yaprakları mayıstan ekime kadar toplanarak kurutulur ve kaldırılır.

    Birleşimi: Meyvelerinin birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Anthocyanidinler (Antosiyanidinler) %0,3-0,8 arasında olup en önemlileri; Cyanidinglikozit, malvidinglikozit, paeonidinglikozit, delphinidinglikozit, petunidinglikozit, pelargonidinglikozit, delphinidin-3-O-arabinosit, delphinidin-3-O-galaktosit
    b) Taninler %6-12 arasında olup en önemlileri; Catechin (Kateşin), Epicatechin ve proantocyanidin B1,B2 ve C1 içerir.
    c) Flavonitlerden; Quercitrin, İzoquercitrin, Hyperosit ve astragalin
    d) İridoitler; Asperulosit ve monotropein
    e) Organik asitlerden; Ferulaasit, kaffeasit, chinaasit, chlorogenasit, malik asit, p-cumarasit ve syringaasit
    f) Vitaminlerden; B ve C-vitamini ile provitamin A (β-Karotin)
    g) Ayrıca minerallerden demir ve potasyum ile şeker ve pektin içerir.

    Yapraklarında;
    a) %4-8 oranında tanin içerir ve Catechin, gallocatechin, epicatechin, epigallocatechin ile proantocyanidin B1,B2 ve C1 içerir.
    b) Flavonollerden; Hyperosit, Izoquercitrin, Quercitrin, meralin, quercetin, astragalin ve avicularin
    c) İridoitlerden; Asperulosid ve monotropein
    d) Organik asitlerden; Kaffe asit, chlorogen asit, chinga asit, procatechinaist ve p-cumarasit
    e) Triterpenlerden; β-Amyrin, Oleanolasit ve ursolasit
    f) Alkaloitlerden; Myrtin ve Epimyrtin
    g) Ayrıca minerallerden krom ve mangan ile vitaminler içerir.

    Araştırmalar: LONICERUS 16.yy.da yaptığı araştırmalarda yaban mersini meyvesinin böbrek ve mesane rahatsızlıklarına, 1742’de WEINMANN ishal ve dizanteriye (kanlı ishal) ve de II. Dünya savaşı sırasında İngiliz bombardıman uçak pilotları akşamları hedeflerini iyi görmesini sağladığı tespit edilmiştir. Bu klasik araştırmaların haricinde son 20 yıldır çok ilmi araştırmalar yapılmış ve bitkinin etkisi belgelemiştir.
    1) Paris Üniversitesi Tıp fakültesi Doku kimyası laboratuarlarında Dr. Robert Boniface, Dr.A.Michel Robert ve ekipleri şeker hastalarında görülen retina anormallikleri (gözün iç tabakasındaki anormal hastalık) yaban mersini meyve ekstresinden elde edilen draje ile (anthocyanidin drajesi) ile tedavi edilebileceğini tespit etmişlerdir. (Nhk.9.98.82)
    2) Göz doktoru Dr.horst Huisman şeker hastalığı nedeni ile retina bo-zukluğu olan hastalarını anthocyan drajesi ile tedavi etmiştir. (Nhk.9.98.83)
    3) Fürstenfeldbruck hava kuvvetleri uçuş tıp enstitüsünden (Flugme-dizinischen İnstitut der Luftwafte in fürsten feldbruck) Dr.Hans Brandl ve ekibi ile Almanya’nın Bayern eyaleti trafik bilimi araştırmalar merkezi kontrol şubesinden (Verkehrwissenschaflichen for schungs zentrum des TÜV Bayern) Prof.Dr.Benedikt von Hebenstreit ve ekibinin ayrı ayrı yaptıkları araştırmalar sonucunda Anthocyan (Antosiyan) drajesinin retina anormalliklerini iyileştirdiği belgelenmiştir. (Nhk.12.996.62)
    4) ABD’de Anthocyan (antosiyan) drajesi (yaban mersini meyve ekst-resinden elde edilen) ile tedavi denemeleri yapılmıştır. Bu drajenin başta katarakt (göze perde inmesi), makula deformasyonu (retina üzerindeki hassas nokta), ışığa karşı duyarlılık, aydınlık ve karanlığa uyum, kılcal göz damarlarında yıpranma ve gece kötü görme gibi rahatsızlıklara karşı iyi geldiği tespit edilmiştir. (Nhp.10.95.1460)

    Tesir şekli: İshali önleyici, dezenfektan, damarları büzücü, teskin edici, peklik yapıcı, kandaki şekeri ayarlayıcı, antiseptik, iltihapları önleyici ve kanamayı durdurucu özelliklere sahiptir.

    Kullanılması:
    a) Kurtulmuş meyvelerinin kullanılması;
    1) Araştırmalara göre; Retina hastalığı (gözün iç tabakası), katarakt (göze perde inmesi), glokom (göz iç basıncının artması), makula de-formasyonu (retina üzerindeki en net ışık alma noktasının yıpran-ması), konjektivit, karanlık ve aydınlığa uyum sağlayamama ve ışığa karşı aşırı hassasiyet (trafikte) gibi göz rahatsızlıklarına karşı etkili olduğu yapılan araştırmalarla tespit edilmiştir.
    2) Komisyon E’nin 23.04.2007 tarih, 76nolu ve 13.03.1990 tarih ve 50nolu monografi bil-dirilerinde yaban mersini meyvesinin ishal, ağız ve yutak iltihaplarına karşı kullanılabileceği beyan edilmiştir.
    3) Halk arasında şeker hastalığı, idrar yolları iltihaplanması, bağırsak kurtları, ağız ve yutak iltihapları, ishal ve dizanteriye karşı dahilen ve haricen de yaralara lapası yapılır.

    b) Yaban mersini yapraklarının kullanılması;
    1) Komisyon E’nin 23.04.1987 tarih ve 76 nolu monografi bildirisine göre yaban mersini yaprağı başta şeker hastalığı, mide-bağırsak, mesane, böbrek, nefes yolları ve kalp rahatsızlıklarına, romatizma, gut ve kan dolaşımı bozukluğuna karşı ve de kanı temizleyici ve me-tabolizmayı çalıştırıcı olarak kullanılabileceği beyan edilmiştir.

    Açıklama: Şeker hastalarının retinasında polimer (birden fazla mole-kül) kollaje (bağ dokusu liflerini oluşturan ana protein) çoğalması ile retina ve çevresindeki diğer dokularda sertleşme, kan dolaşımı ye-tersizliği nedeni ile görme bozuklukları ve hatta körlüğe dahi neden olabilirler. Bunları antocyanlar azaltır ve retina normal çalışabilir. 2) Halk arasında aynı maksatla kullanılır.

    Çayı: Kurutulmuş meyveleri bütün olarak ezilerek veya öğütülerek elde edilen tozundan 5-10gr demliğe konur ve üzerine soğuk su ilave edilerek 5-10dk kaynatıldıktan sonra süzülerek içilir. 1 kahve kaşığı 4gr, 1 yemek kaşığı 10gr gelir. Yapraklarından dahilen çay içilecek ise 1gr yaban mersini yaprağı demliğe konur ve üzerine 300-400ml kaynar su ilave edilerek 5-10dk demlenmeye bırakılır ve sonra süzülerek içilir.

    Çay harmanları:

    Gökçek ağız ve yutak iltihapı çayı;
    >20 gr Papatya çiçeği
    >30 gr Adaçayı yaprağı
    >20 gr Y. Mersini meyvesi
    >20 gr Beşparmak kökü
    >10 gr Arnika çiçeği

    Gökçek ağız ve yutak iltihapı çayı;
    >20 gr Papatya çiçeği
    >20 gr Rezene tohumu
    >20 gr Y. Mersini meyvesi
    >20 gr Ebe gömeci çiçeği
    >20 gr Adaçayı yaprağı

    Gökçek ishale çayı;
    >25 gr Beşparmak kökü
    >25 gr Nane yaprağı
    >25 gr Papatya çiçeği
    >25 gr Oğulotu yaprağı

    Gökçek Diyabet çayı;
    >30 gr Keçisedefi otu
    >20 gr Y. Mersini yaprağı
    >20 gr Fasulye kapçığı
    >20 gr Hindiba ot ve kökü
    >10 gr Nane yaprağı

    Yan tesirleri: Meyvelerinin bilinen bir yan tesiri yoktur. Fakat yaprak-larının tarife uygun kullanılması ve 6 haftadan fazla çayının içilmemesi gerekir.
    Kübra Maria Kayra
    Annem gözlük kullanıyordu kaç doktor dedi gözlüğü atamazsın ama önce Allah sayesinde sonra İBRAHİM HOCANIN YABAN MERSİNİ SETİ SAYESİNDE GÖZLÜĞÜ ATTI. Benimde MİDE RAHATSIZLIĞIM VARDI İBRAHİM HOCA SAYESİNDE GEÇTİ Allah razı olsun hocam. Allah sizi başımızdan eksik etmesin.
    KAYNAK

    Merve Doğan
    Ben de RETİNA YIRTILMASI için YABAN MERSİNİ SETİ kullanıyorum, 5 günde eskisine göre azalma oldu.
    KAYNAK

    Sıla Nur
    Günaydın hocam Allah razı olsun. YABAN MERSİNİ SETİNİ kullanıyorum OZON YAĞI da mükemmel bir ürün ÇOK İYİ GELDİ tavsiye ederim.
    KAYNAK

    sibel_hicabi
    İbrahim bey sizin YABAN MERSİNİ SETİ sayesinde GÖZÜMDEKİ ÜVEİT ve GÖZ TANSİYONUM GEÇTİ çok teşekkür ediyorum ama yinede kullanmaya devam ediyorum 6. kutudayım.
    KAYNAK

    Mustafa CAMGÖZ
    GÖZ TANSİYONUM için kullanmış olduğum YABAN MERSİNİ SETİNİN ÇOK FAYDASINI GÖRDÜM teşekkür ederim.
    KAYNAK

    Alper Öztürk
    ORMUS GMS ürün ÇOK FAYDALI. Babama GÖZ SORUNLARI için YABAN MERSİNİ SETİ ile beraber kullandırarak, sadece birer kutu için çok olumlu olduklarını deneyimleyerek buradan aktarıyorum FAYDALI YÖNDE ÜRÜNLER.
    KAYNAK

    Hüseyin Dağlı
    Bende YABAN MERSİNİ SETİ KULLANDIM +2.50'den +1.75'e DÜŞTÜ GÖZÜM, FAYDASI BAYAĞI OLUYOR, sabır istiyor hocamdan Allah razı olsun. KAYNAK

    Sevde Nur
    İbrahim Gökçek amin inşallAllah Allah razı olsun YILLARDIR TAKIYORUM GÖZLÜKLERİ HİÇ BİR DEĞİŞİKLİK YOKTU. Evvel Allah’ın izniyle sizin YABAN MERSİNİ SETİ SAYESİNDE FARKLILIKLARI GÖRÜNÜYOR.
    KAYNAK

    Ayşe Uzan
    Kızımın GÖZLERİNDE MİYOP vardı. Ara ara da ağrıyordu. Bizde sizin ürünlerden YABAN MERSİNİ SETİ kullandırdık. GÖZLÜKTEN TAMAMEN KURTULDU. Allah razı olsun.
    KAYNAK

    Afrikalı Bungalov
    Hocam Allah razı olsun sizden. Ürünlerinizi 1,5 aydır kullanıyorum. Aynaya baktığımda GÖZLERİMİ İÇİNİN PARLADIĞINI GÖREBİLİYORUM. SABAHLARI ARTIK DİNAMİK ZİNDE KALKABİLİYORUM. YABAN MERSİNİ SETİ kullanıyorum.
    KAYNAK

    Merve Doğan
    Ben de RETİNA YIRTILMASI için YABAN MERSİNİ SETİ kullanıyorum, 5 günde eskisine göre azalma oldu.
    KAYNAK

    sibel_hicabi
    İbrahim bey sizin YABAN MERSİNİ SETİ sayesinde GÖZÜMDEKİ ÜVEİT ve GÖZ TANSİYONUM GEÇTİ çok teşekkür ediyorum ama yinede kullanmaya devam ediyorum 6. kutudayım.
    KAYNAK

    Murat Dede
    Daha önce YABAN MERSİNİ O SETİ kullandım GÖRÜŞÜM BAYAĞI DÜZELDİ ürünlerden çok memnun kaldım şimdi bir buçuk ay geçti kapsülden tekrar sipariş veriyorum her şey için teşekkürler hocam.
    KAYNAK

    Mahir Ozan
    YABAN MERSİNİ SETİNİ YAŞ TİP SARI NOKTA rahatsızlığı nedeniyle kullandım. Göz kontrolü için gittiğimde KANAMANIN DURDUĞUNU ve GÖRÜŞ BOZUKLUĞUMUN AZALDIĞINI ÖĞRENDİM. Göz içine yapılan enjeksiyonun etkisini olumlu olarak arttırıyor. Benzer rahatsızlığı olanlara tavsiye ederim.
    KAYNAK

    Nedime Taner
    YABAN MERSİNİ SETİ kullandım ORMUS GLD kullandım çok memnun kaldım teşekkürler hocamıza.
    KAYNAK

    Emre Turan
    YABAN MERSİNİ SETİNİ yaş tip SARI NOKTA RAHATSIZLIĞI nedeniyle kullandım. 6 Hafta sonra göz kontrol için gittiğimdeKANLANMANIN DURDUĞUNU ve GÖRÜŞ BOZUKLUĞUNUN DÜZELDİĞİNİ söyledi doktor. Benzer rahatsızlığı olanlara tavsiye ederim. İbrahim beye teşkkür edrim sağolsun beni büyük sıkıntıdan kurtardı.
    KAYNAK

    Salim Altay
    YABAN MERSİNİ Seti GÖZÜMDEKİ RETİNA YIRTIĞINI tedavi etti, lazerle özel bir hastanen de kapattık yırtığı dediler. Bir ay boyunca iki gözümde de şimşek çaktı karartılar daha da çoğaldı YABAN MERSİNİ SETİ kullandım 3 günde ŞİMŞEK ÇAKMASI geçti, SİYAH GÖLGELER yok oldu. Ormus gold ürünü rüyalarımı netleştirdi, kalitesini yükseltti. Ormus gümüş olağanüstü bir ürün 50 ml Ormus gümüş kullandım bu kış grip olmadım. Başka çeşitli birçok ürünler aldım hepsi mükemmel ötesi. Hocam Mevlam size uzun ömür ameller versin, Sağlık bakanlığı bu ürünlerinizi bize reçete ile vermesi için vatandaş olarak ne yapmamız gerekiyor. Nereye yazalım devlet makamları bu doğal mucizeleri bizim ağzımızdan dinlesin, analizler yapsın hiçbir sakıncası yok ben ayrı ayrı günde on tane ürünlerinizden kullandım hiçbir yan etkisi yok ağrı kesiciler antibiyotikler vs. yıllarca biz zehirledi. Hiçbir yararı yok 5 aydan beri hiçbir ilaç kullanmıyorum çok rahatladım geçmişlerinize rahmet. Yarın yine bazı siparişlerim olacak hocam sağlıcakla kalın emeklerinizin mevlam kat kat mükafatını versin yalnız insanlar önce Allah bu bitkilerin şifasını kendi kudretinden nüksetmiş diyecek inanacak ha şarlatan, sahtekarlarda insanları korkutmuş inancını kırmış.
    KAYNAK

    Oya Şentürk
    BAĞIRSAK MANTARI CANDİDADAN kurtulmak için 12 gündür su orucu yaptım. Bağırsak mantarı candidanın üretmiş olduğu toksik maddeler o kadar vücuda depolanmış ki GÖRME ZAFİYETİ yaşadım. Kör olma noktasına geldim. İbrahim bey ile görüştüm YABAN MERSİNİ SETİ kullanmamı tavsiye etti. Çok şükür Yaban Mersini Seti ile KÖR OLMAKTAN KURTULDUM. Allah hocamdan razı olsun. Bu candida çok kötü bir illet.
    KAYNAK

    Orhan Öztürk
    4 Aydır YABAN MERSİNİ SETİ kullanıyorum GÖZLERİMDE KURULUK oluyordu UZAĞI GÖRMEKTE ZORLUK ÇEKİYORDUM. İlerideki bir tabelaya bakarken bulanık görüyordum Allah'a şükür hocamın ürünleri gözlerime çok iyi geldi. Hocamın bir sürü ürünü var hepsi çok faydalı olduğuna inanıyorum. Artık doktorların verdiği kimyasallar ile zehirlenmeyi bıraktım. Gözlerimde kuruluk yok artık uzağı daha net görebiliyorum Allah razı olsun hocam.
    KAYNAK

    Bengü Soral
    Hayırlı yayınlar hocam. Allah senden razı olsun GÖZÜMDE rahatsızlık vardı. YABAN MERSİNİ SETİ ile her geçen gün daha iyiye gidiyor.
    KAYNAK

    Bengü Soral
    Herkese hayırlı akşamlar. BİR CİSME BAKTIĞIMDA, CİSMİN SOL TARAFININ ORTA KISMINDA GÖRMEDE SORUN YAŞIYORDUM. Birçok doktora gittim ve doktorlar beynin arka tarafındaki görmeye etki eden kısımda bir hasar olduğunu bu yüzden GÖRME SORUNU ile ömür boyu yaşayacağımı ve tedavisinin olmadığını ilettiler. Bu haberi aldıktan sonra resmen dünyam başıma yıkıldı. Ailem ve arkadaşlarımda bu konuda bana birçok öneride bulundu. Fakat bir arkadaşım İbrahim beyin birçok hastalığa çözüm ürettiğini belirtti ve ısrarla İbrahim bey ile görüşmemi söyledi. Arkadaşımın ricasını kıramayıp İbrahim beyin yanına geldik ve durumu anlattığımda YABAN MERSİNİ SETİ kullanmam gerektiğini belirtti. Tıpta tedavisinin olmadığını belirttim kendisi de denemekten bir zarar görmezsin dedi. Arkadaşımın da ısrarıyla açıkçası inançsız bir şekilde ürünleri kullanmaya başladım. 2 haftadır ürünleri kullanıyorum GÖRÜŞÜMDE BARİZ BİR GELİŞME OLMAYA BAŞLADI. Bugün İbrahim beyin yanına gittim durumu anlattım. Kendisi de duruma çok sevindi ve ürünlere ara vermeden arttırarak devam etmemi tavsiye etti. Bu kadar kısa sürede mucize gelişmeler yaşadım çok sevinçliyim. İbrahim beyden Allah razı olsun. Bu kadar ümitsizlik yaşadığım bir anda İbrahim bey sayesinde ilk defa iyileşeceğime inanıyorum. Bu mutluluğu herkesle paylaşmak istedim.
    KAYNAK

    Mert Efe
    4 Gün oldu GÖZ RAHATSIZLIĞIM için YABAN MERSİNİ SETİ kullanıyorum 1 yıldır çektiğim KONJONKTİVİT rahatsızlığım bariz iyi geldi. Allah razı olsun İbrahim Hocam.
    KAYNAK

    Mert Efe
    Hocam YABAN MERSİNİ SETİ kullanıyorum 2 haftada GÖZÜMDEKİ KANLANMA AZALDI, GÖRÜŞÜMDE FARKLILIK HİSSEDİYORUM Allah razı olsun.
    KAYNAK

    cakirgozgulsen
    ALFA LİPOİK KAPSÜL ürününü denemek için 1 ay kullandım kendimi daha ENERJİK daha hafif hissettim diğer kullandığım ürünler gibi çok memnun kaldım şu an da GÖZ BOZUKLUĞU için YABAN MERSİNİ SETİ kullanıyorum bir haftada etkisini gösterdi.
    KAYNAK

    hasan_duraliii
    Ablamın SARI NOKTA rahatsızlığı için YABAN MERSİNİ SETİ kullandık ciddi oranda düzelmeler oldu. Üründe emeği geçen herkesten Allah razı olsun.
    KAYNAK

    Şadiye Çetinkaya
    Hocam Allah sizden razı olsun GÖZÜM BOMBELEŞMİŞTİ KERATOKONUS olmuştum sizden YABAN MERSİNİ SETİ aldım 6 haftalık kullanımdan sonra iyileştiğimi gözlemledim. Doktora kontrol amaçlı gittiğimde bir sorunum kalmadığımı ne kullandığımı sordum Yaban Mersini seti kullandığımı söyledim şaşırdı iyiymiş dedi.
    KAYNAK

    Onur Korkmaz
    GÖZ PROBLEMLERİ için babama YABAN MERSİNİ SETİ kullandırdık sadece 2 ay kullandı UZAĞI GÖRME PROBLEMİNDE ÇOK İYİ geldiğini deneyimleyerek buradan aktarıyorum
    KAYNAK

    Eda Aksöz
    GÖZLERİM YAKINI GÖRMÜYORDU çok BULANIKLIK vardi ibrahim beyi aradim YABAN MERSİNİ SETİ kullan dedi kendisi 1 aydır kullanıyorum çok büyük değişiklikler var DAHA NET GÖRMEYE başladım düzenli olarak kullanmaya devam edeceğim teşekkürler hocam
    KAYNAK

    Ülkü Çiçek Yaşar
    GÖZLERİM VİRÜSTEN kaynaklı, bilgisayar ekranına bakarken yazıları ÇİFT GÖRMEYE başladım. Bende hocamın ORMUS YBN ürününü GÖZ KAPAKLARIMA ve KİRPİKLERİME günde 5 defa sürdüm. 2 hafta sonra GÖZLERİM NORMALE DÖNDÜ bu aradada KİRPİKLERİM UZADI. Herkese tavsiye ediyorum çok teşekkür ederim hocam, Rabbim ilminizi artırsın.
    KAYNAK

    Oğuz Uluçay
    Telefonda yazıları YAKINDAN OKUYAMADIĞIMI ve GÖZLERİMDE SULANMA olduğumu farkettiğimde araştırmalarımda Gökçek YABAN MERSİNİ SETİ kullanmanın fayda sağlayacağını gördüm. 4 ay kullandım ŞUANDA DAHA NET GÖRÜYORUM ve SIKINTILARIMIN AZALDIĞINI farkettim. Teşekkürler Gökçek bey GÖRME ve SULANMA PROBLEMİ olanlara tavsiye ederim.
    KAYNAK

    H. Ali Güngör
    GÖZDE SARI NOKTA hastalığı var YABAN MERSİNİ SETİ kullanıyorum faydasını gördüm.
    KAYNAK

    mervey4
    Gökçek Şifa'nın 2017'den beri tüm ürünleri kullandım. YABAN MERSİNİ SETİ ile ileri derecede RETİNA BOZUKLUĞUNA iyi yönde ilerlemesine katkı sağladı. YABAN MERSİNİ kullanınca GÖZLERDE ÇOK GÜZEL NETLİK oluştu. İbrahim Gökçek hocamıza teşekkürlerimizi sunuyor, sağlıklı günler diliyorum
    KAYNAK

    salih.caliskan.750
    Ben GÖZLERİM için YABAN MERSİNİ SETİ kullandım. Gözlerim televizyon izlerken yazıları seçemiyordum. 1 ay YABAN MERSİNİ SETİ kullandıktan sonra herhangi bir GÖRME PROBLEMİM kalmadı. İbrahim hocam ve ekibine sonsuz teşekkürler. Allah razı olsun. İyi ki varsınız.
    KAYNAK

    Mehmet Güngör
    Göz kuruluğu sorunu yaşıyordum. İbrahim Gökçek hocadan aldığım yaban mersini seti ile hiç bir rahatsızlığım kalmadı. Gözüme iğne yapılıyordu, kurtuldum çok şükür.
    KAYNAK

    Yahya Temiz
    GÖZ RAHATSIZLIĞIM için YABAN MERSİNİ SETİ kullanıyorum gözlüksüz telefona bakabiliyorum ayrıca vücut bağışıklığını güçlendiriyor.Allah Razı Olsun Hocam.
    KAYNAK

    Mehmet Küçükkaya
    Sn hocam bende tavsiyemiz üzerine YABAN MERSİNİ 1. Setini bitirdim. Fayda olarak GÖZ TANSİYONUM 16-17 den 14-15 seviyelerine geldi.İnşallah 2. Seti de kullanıp daha çok fayda görmek isterim
    KAYNAK

    Sevilay Aksoy
    Merhaba ben GÖZ KURULUĞU içinde YABAN MERSİNİ SETİ kullandım, FAYDASINI gördüm çok teşekkür ederm
    KAYNAK

    Adnan Avci
    YABAN MERSİNİ SETİ kullanıyorum GÖZ RAHATSIZLIĞIM için ÇOK FAYDALI hocama saygılar...
    KAYNAK

    Andan Avci
    Bende katarakt için yaban mersini y seti kullanıyorum gayet güzel iyi bir sonuca doğru gidiyor hocamın diğer bazı ürünlerini de kullanıyorum teşekkürler hocam
    KAYNAK

    Nazmiye İçöz Kestaneci
    İbrahim hocam sizden gözüm için YABAN MERSİNİ SETİ almıştım kullanıyorum salı günü göz doktoruna gittim gözümdeki ASTİGMAT geçmiş ve GÖZLÜK NUMARAMDA DÜŞME olmuş çok sevindim teşekkür ederim.
    KAYNAK

    Furkan Aydın
    Gözlerim için YABAN MERSİNİ SETİ kullanmıştım Bugün doktor kontrolüne gittim ASTİGMAT ortadan kalkmıştı.Allah razı olsun,
    KAYNAK

    Emre Kara
    sarı nokta hastalığımdan dolayı kör olma riski ile karşı karşıyaydım. sizin ürünleri 4 aydır kullanıyorum artık çok iyiyim. bıraksam bir sorun olur mu hocam
    KAYNAK

    Bayram Çelik
    hocam allah sizden razı olsun 7 yaşında oğlum. atipik otistik bizimle bağlantı kurmuyordu, konuşmuyordu, göz teması yoktu şimdi göz teması var sorulan sorulara cevap veriyor gelişmeler güzel. sağolun varolun. 3 aydır kullanıyoruz daha uzun süre kullanacağız herhalde saygılar

    KAYNAK
    Taşkın Orak
    Ben yaklaşık bir yıl önce GÖZ PROBLEMİM için YABAN MERSİNİ SETİ kullandım . Çok faydalı geldi . Tavsiye ediyorum
    KAYNAK

    Adnan Avcı
    Bende YABAN MERSİNİ SETİ kullanıyorum çok memnunum GÖZ SORUNLARI olanlara tavsiye ederim
    Hocama saygılar her ürünü mükemmel
    KAYNAK

    Tc Güler Başarır
    GÖZLERİM BOZUK OLDUĞU için YABAN MERSİNİ SETİNİ alıyorum bende kullanıyorum çok MEMNUNUM
    KAYNAK

    Halil Şahin
    YABAN MERSİNİ SETİNDEN çok memnunum UZAĞI GÖREMEME PROBLEMİM KALMADI DAHA NET GÖRÜYORUM düzenli kullanmaya devam edeceğim allah razı olsun
    KAYNAK

    Emir Can
    Yaban mersini ye seti aldım faydasını çok gördük iyiki varsınız hocam çok teşekkür ederim
    KAYNAK

    Oktay Kunt
    Hocam ürünlerinizi kullandık , kullanmaya da devam ediyoruz.Biz çok faydasını gördük.
    Allah'u Teala razı olsun.
    Doğum gününüzü de kutluyorum.
    Allahu Teala hayırlı ömürler versin inşaallah
    KAYNAK

    Sebahattin Koklu
    Geçen ay sizlerden GÖZ TANSİYONU için YABAN MERSİNİ SETİNİ almıştım. Göz tansiyonum 20 nin altına inmiyordu. İkiside tabiki. Gönderdiğiniz seti düzenli kullandım. 3 gün önce kontrole gittim. Sonuç 16'ya kadar inmişti.Bu duruma hocada şaşırdı.Bende OPERASYONDAN KURTULDUM.
    KAYNAK

    Atilla Ercin
    YABAN MERSİNİ SETİ Kullanıyorum LENS ve GÖZLÜĞÜ bıraktım herkese tavsiye ederim
    KAYNAK

    Beter Sinan
    Slmlar saygılar hocam UZAK GÖRMEDE sorun vardı YABAN MERSİNİ SETİ kullandım Uzak için FAYDA GÖRDÜM 1 ay oldu teşekkürler
    KAYNAK

    TC Güler Başarır
    Merhaba abime GÖZ BOZUKLUĞU için YABAN MERSİNİ SETİ kullandırtıyoruz faydasını görüyor ve kullanmaya devam ediyoruz inş
    KAYNAK

    Emir Can
    Selamun Aleyküm hocam hayırlı yayınlar iyi varsınız aldığımız Ğöz kurulu ve birofolit iltahaplanması için 10 günde etkisini gösterdi Allah işinizi gücünüzü rasgetirsin
    KAYNAK

    Adem Dalgıç
    superkritik yağlarınızı kullanıyoruz. çok çok memnunuz siz bir tanesiniz hocam sağolun varolun
    KAYNAK

    Eyup Cengiz Çakmak
    Oğlum Oğuz un keratakonus göz rahatsızlığı için yabanmersini setini 3 ay kullandıktan sonra
    Ankara da üniversite hastanesinde göz kliniğinde yapılan tetkikler sonucu sol gözü 10 üzerinden 2 görme özelliği 5 no.ya, sağ gözü 10 üzerinden 7 görme özelliği 9.50 ye yükseldiğini doktorları söylüyorlar. Halen de yaban mersini eksratını kullanıyor. 6 aylık kontrollerinde keratakonus göz rahatsızlığının stabil hale geldiğini söylemiş göz doktorları.
    KAYNAK

    Deniz Koçak
    Siz süpersiniz ve ürünleriniz bir harika
    KAYNAK

    Halil Can
    YABAN MERSİNİ SETİ kullanıyorum 1 yıldır çektiğim GLOKOM rahatsızlığıma faydası oldu teşekkürler.
    KAYNAK

    Halil Sahin
    GÖZLERİM BULANIK GÖRÜYORDU. YABAN MERSİNİ SETİ ile CAM GİBİ NETLEŞTİ GÖRÜNTÜ. Teşekkürler Gökçek.
    KAYNAK

    Mehmet Kutlu
    Allah ilmini ziyade etsin hocam,insanlık sizin eliniz yoluyla şifa bulsun sıhhat bulsun inşaallah
    KAYNAK

    @turhandemir5910
    Allah eksikliğini vermesin. Ürünleri mükemmel ve yan etkisiz. Gidin eczaneden herhangi bir ilac alın ve içeriğini okuyun en az 10 tane yan etkisi vardır. Yan etkisiz ilaç uretemiyorlar maalesef. Bu işte ehil ve alternatif olarak gideceğimiz bir adres olarak İbrahim abinin varlığı vallahi bana güven veriyor
    KAYNAK

    Nedime Taner
    Hayırlı cumalar olsun ibrahim beyin bütün ürünleri çok iyi geliyor YABAN MERSİNİ KAPSÜLÜ GÖZ, KIRKKİLİT KAPSÜLÜ BEL, HAMAMELİS KAPSÜL ise EGZAMA için kullandım çok memnun kaldım
    KAYNAK

    Bayram Çelik
    Gökçek Şifa'nın ürünlerini 2017den beri kullanıyoruz ailecek Çook memnun kaldık YABAN MERSİNİ SETİ ile ileri derecede RETİNA BOZUKLUĞUNA karşı iyi yönde katkı sağladı.Artık daha net görebiliyorum. İbrahim Gökçek hocamıza teşekkürlerimizi sunuyor, sağlıklı günler diliyorum
    KAYNAK

    Belya Belya
    Gôzlerimde GECE GÖRÜŞÜ IŞIKLARA BAKAMIYORDUM surekli gôlgeler olusuyordu.YABAN MERSİNİ SETİ ile hizli bir seklide GÖZLERDE NET GÖRME ve GÖLGELER ORTADAN KALKTI. Çok faydasini gôrdum diger eksraklarin sonuclarinida zamanla yazarim.... İbrahim beye Allah uzun ômurler versin ve degerini kiymetini bilin avrupa'da boyle bir insan yok
    bu urunlerin esamesi yok herseyin kimyasali her seyin alkollusu ilac diye satiliyor Allah herkese sifa versin saygilar
    KAYNAK

    Hüseyin Hamamcıbaşı
    Gözde ÜVEYİT ATAKLARI için YABAN MERSİNİ SETİNİ kullandım hocam Allah razı olsun ATAKLARIM BİTTİ denebilicek kadar azaldı. Allah hayırlı müşteriler versin.
    KAYNAK

    Havva Yavuz
    Hocam YABAN MERSİNİ SETİ kullandım GÖRÜŞÜM BAYAĞI DÜZELDİ ürünlerden çok memnun kaldım.
    KAYNAK

    Kadir Bulut
    Değerli hocam YABAN MERSİNİ SETİ gibisi var mı? GÖRMEM %80 KESKİNLEŞTİ, Sanki GÖZLERİMİN ÖNÜ CAM GİBİ AYDINLANDI, adeta IŞIK SAÇIYOR. BAŞIMDAKİ AĞRILARDA GEÇTİ.
    KAYNAK

    Hüseyin Hamamcıbaşı
    Hocam YABAN MERSİNİ SETİ kullandım çok memnunum şifa bulmaya başladım, GÖZLERİM rahat etti Görme kalitem arttı. Allah razı olsun sizden .
    KAYNAK

    @mujganpeker9960Yolunuz acık olsun ibrahim bey sizden güvenle ürünlerinizi herkezin almasını tavsiye ederim korkmasınlar zararı olur diye SARI NOKTA için YABAN MERSİNİ SETİNİ aldım Allah razı olsun sizden fark ettim ki 5 günde GÖZÜMÜN GÖRMESİ arttı SARI NOKTA düzeldi çok şükür hergün daha iyiye Gidiyor 9 iğne attı gözüme Dr bu günüme çok şükür iyiyim ben bile şaşırdım herkeze tavsiye ediyorum Rabbim herkeze sağlık versin ürünleri korkmadan kullansınlar Rabbim sizleri başımızdan eksik etmesin Allah'a emanet olun inşallah mutluyum herdaim mutlu olun inşallah Allah ıma emanet olun hayırlı geceler
    KAYNAK

    Enis Durmuş
    Gözüm için YABAN MERSİNİ SETİ kullanıyorum DAHA NET GÖRMEYE başladım.
    KAYNAK

    Aykut Yalcin
    Gönül rahıtlığınla İbrahim Gökçek ürünlerini kullanabilirler.YABAN MERSİNİ SETİNİ GÖZ PROBLEMİM için kullandım memnunum Rabbim yolunuz açık olsun inşallah.
    KAYNAK

    Recep Cetin
    SARI NOKTA için YABAN MERSİNİ SETİ aldım Allah razı olsun sizden fark ettim ki 5 günde GÖZÜMÜN GÖRMESİ arrtı SARI NOKTA düzeldi çok şükür hergün daha iyiye gidiyor
    KAYNAK

    Nedime Taner
    YABAN MERSİNİ SETİ kullandım çok memnun kaldım DAHA NET GÖREBİLİYORUM teşekkürler hocamıza
    KAYNAK

    Ismail Yılmazer
    Ben dr.ismail Yılmazer Selam eşim için COLLAGEN KAPSÜL ve YABAN MERSİNİ KAPSÜL aldım KIRIŞIKLIKLARI DÜZELDİ cildi parlamaya başladı bir aydınlık geldi yüzüne ayrıca GÖZLERİ İYİ GÖRMEYE başladı tskler.Bas tacisiniz.Allah razı olsun
    KAYNAK

    Kadriye Yavuz
    GÖZ PROBLEMLERİ için babama YABAN MERSİNİ SETİ kullandırdık sadece 2 ay kullandı uzağı görme probleminde çok iyi geldiğini deneyimleyerek buradan aktarıyorum
    KAYNAK

    Havva Yavuz
    Hocam YABAN MERSİNİ SETİ kullandım GÖRÜŞÜM BAYAĞI DÜZELDİ ürünlerden çok memnun kaldım.
    KAYNAK

    Sufi Derviş
    Ben Hayriye kandeğer YABAN MERSİNİ SETİNİ 5 ay süredir kullanıyorum GÖZLERİME çok faydası oldu tavsiye ederim
    KAYNAK

    Nedime Taner
    Bende YABAN MERSİNİ SETİ kullandım çok memnun kaldım GÖZLERİM DAHA NET görmeye başladı.Teşekkürler ibrahim hocamıza bütün ürünleri çok çok muhteşem
    KAYNAK

    Kübra Maria Kayra
    Gözüm çok kötüydü YABAN MERSİNİ SAFRAN GİNKGO GOJİ BERRY kullandm %20 görüyordm şuan ibrahim hoca sayesinde %70 görmeye başladm Allah razı olsun ibrahim hocadan
    KAYNAK

    Sufi Derviş
    Ben YABAN MERSİNİ SETİNİN faydasını çok gördüm tanıdıklarımada tavsiye ettim onlarda faydasını gördü GÖZLERİMDEKİ KANLANMA bitti çok teşekkür ederim hocam
    KAYNAK

    Alkın Küçükbayrak
    YABAN MERSİNİ SETİ için çok teşekkürler, bilgisayara bakmaktan yorulan GÖZLERİME ÇOK İYİ geliyor. Saygılar.
    KAYNAK

    Nedime Taner
    YABAN MERSİNİ SETİNİ bende kullandım GÖZLERİM DAHA NET görmeye başladı çok memnun kaldım teşekkürler ibrahim beye
    KAYNAK

    Enis Durmuş
    Yaban mersini kapaül kullanıyorum. Gözlerim daha net görüyor.
    KAYNAK

    Sufi Derviş
    Yaban mersini seti çok güzel bir ürün çok memnun oldum herkese tavsiye ederim
    KAYNAK

    Beyhan Satılmış
    Yaban mersini seti sayesinde gözümüzdeki rahatsızlık iyiye gidiyor
    KAYNAK

    Bayram Çelik
    YABAN MERSİNİ SETİ ile ileri derecede RETİNA BOZUKLUĞUNA karşı iyi yönde katkı sağladı. Artık daha net görebiliyorum. İbrahim Gökçek hocamıza teşekkürlerimizi sunuyor, sağlıklı günler diliyorum
    KAYNAK

    Mehmet Küçükkaya
    Sn hocam bende tavsiyemiz üzerine YABAN MERSİNİ 1. Setini bitirdim. Fayda olarak GÖZ TANSİYONUM 16-17 den 14-15 seviyelerine geldi. İnşallah 2. Seti de kullanıp daha çok fayda görmek isterim
    KAYNAK

    Nazmiye İçöz Kestaneci
    İbrahim hocam sizden gözüm için YABAN MERSİNİ SETİ kullanıyorum salı günü göz doktoruna gittim gözümdeki ASTİGMAT geçmiş ve GÖZLÜK NUMARAMDA DÜŞME olmuş çok sevindim teşekkür ederim.
    KAYNAK

    Emir Can
    GÖZ KURULUĞU ve BİROFOLİT İLTİHAPLANMASI için YABAN MERSİNİ Y SETİ kullandım 10 günde ETKİSİNİ GÖSTERDİ Allah işinizi gücünüzü rast getirsin.
    KAYNAK

    Eyup Cengiz Çakmak
    Oğlum Oğuz un KERATAKONUS GÖZ RAHATSIZLIĞI için YABAN MERSİNİ setini 3 ay kullandıktan sonra
    Ankara da üniversite hastanesinde göz kliniğinde yapılan tetkikler sonucu sol gözü 10 üzerinden 2 görme özelliği 5 no.ya, sağ gözü 10 üzerinden 7 görme özelliği 9.50 ye yükseldiğini doktorları söylüyorlar. Halen de yaban mersini eksratını kullanıyor. 6 aylık kontrollerinde keratakonus göz rahatsızlığının stabil hale geldiğini söylemiş göz doktorları.
    KAYNAK

    Burcu Durusu
    GÖZ TANSİYONUM 32-33'e kadar çıkıyordu. Panik oluyordum, YABAN MERSİNİ SETİNİ kullanmaya başladığımdan bu yana GÖZ TANSİYONU 20'lere kadar düştü çok şükür.
    KAYNAK

    Konu ozgurcay tarafından (https://bitkiara.com/vb5/member/18435-ozgurcay Saat 09 November 2023, 15:10 ) değiştirilmiştir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    KERATOKONUS Hastalığı; Korneanın Koni Şeklinde Sivrileşmesinin Yaban mersini Seti ile Tedavisi


    Resveratrole benzeyen ve aynı aile de bulunan pterostilben fenollü bir bileşik Siyah Üzümü ve Yaban Mersini gibi çok fazla yiyecek ve içecekte küçük oranlarda mevcut. Ara...

    Beyninizi Serbest Radikal Hasardan Koruyan Meyve: Yaban Mersini
    Böğürtlenlerin senin için iyi olduğunu biliyorsun. Antioksidanlar açısından zengindirler. Ancak bir meyve diğerlerinden daha güçlüdür. Aslında, USDA bilim adamları, 40'tan fazla meyve ve sebzeye kıyasla, en yüksek serbest radikal savaşçı seviyelerine sahip olduğunu buldular. Ayrıca, domatesten 20 kat daha fazla antioksidan güce sahiptir… ve beta-karotenden 10 kat daha fazla. Hangi meyveden bahsediyorum? Ben yaban mersini hakkında konuşuyorum. Yaban mersini sadece diğer meyvelerden daha fazla antioksidan güce sahip değildir. Ama daha da önemlisi, antosiyaninlerle doludurlar. Antosiyaninler, kan-beyin bariyerini geçebilen birkaç antioksidan sınıfından biridir. Bu, beyninizin içine girebilecekleri ve hafızanızı yiyip bitiren her türlü beyin pasını temizleyebilecekleri anlamına gelir. Antosiyaninlere ek olarak, yaban mersini pterostilben ("ter-oh-hala-bean" olarak telaffuz edilir) adı verilen bir bileşik açısından da zengindir. Araştırmalar, pterostilbenin resveratrolden daha güçlü olduğunu gösteriyor çünkü 4 kat daha iyi emiliyor. Ayrıca vücudunuzda 7 kata kadar daha uzun süre kalır. Daha da şaşırtıcı olan pterostilben, daha keskin bir hafızayı destekleyen genleri "açma" yeteneğine sahiptir. Ve beyin yaşlanmasını ve zihinsel gerilemeyi hızlandıran genleri KAPATMA yeteneği.

    Resveratrole benzeyen ve aynı aile de bulunan pterostilben fenollü bir bileşik Siyah Üzümü ve Yaban Mersini gibi çok fazla yiyecek ve içecekte küçük oranlarda mevcut. Araştırmacılar bu maddelerin alımının, şeker ve benzeri hastalıklara sebep olan vücut yağı üretiminin azaldığını , hayvan deneklerde gözlemlediler. İspanyol Biyomedikal Araştırma Merkezi – Obezite ve Beslenme Fizyopatolojisi (CIBERobn)’un Carlos III Sağlık Enstitüsü ve Birleşmiş Miletler Ziraat Departmanı’nındaki grupların kolobrasyonu ile yürütülen çalışmada, pterostilben’in şeker ve benzeri diğer hastalıklara sebep olan vücut yağının yapımını azalttığını gözlemlediler. Obezite, çok büyük bir grup faktörün sebep olabileceği kronik bir hastalık, ve vücut yağının yüksek oranda birikmesi olarak tanımlanıyor. Gelişmiş ülkelerde çok yaygın olan metabolik bir hastalık ve ciddi hastalıklar, insülin direnci, diyabet, karaciğer yağlanması, hücre zarı yağ oranı ve hiper tansiyon gibi değişikliklere sebep oluyor. Düşük kalori diyeti yapmak ya da uzun vadede uygun fiziki aktivite yapmak gibi obeziteyi engelleyici ve tedavi edici geleneksel yöntemler bulunuyor. Yine de bu stratejilerin etkileri kısıtlı ve her zaman istenilen sonucu veremiyor. Bu durumda, bazı fonksiyonel besin grupları eklediğimizde , diyetimiz daha başarılı sonuçlar veriyor. Fenollü bileşikler bu gruplardan biri ve pterostilben bu gruba dahil. Pterostilben , içinde üzüm, yaban mersini, fındık ve kırmızı şarabın da bulunduğu, ve insanların çokça tükettiği çok büyük bir yiyecek ve içecek grubunda bulunuyor. Şu an süren birkaç çalışmada bu molekülün etkileri analiz edliyor ve çoğu kansere olan etkileriyle ilgili. Klinik öncesi araştırmanın ilk ayağını oluşturan bu araştırma hayvan modellerinde bu bileşiğin obeziteye etkilerini denetliyor.Bu modelde pterostilben, adipoz dokusunda yağ sentezini azaltarak vücut yağını azaltıyor ve karaciğerdeki oksidasyonunu (yakımını) artırıyor . Bu ümit verici sonuçlar, anti-obezite etkisi görülmesinden kaynaklı olarak gelecekteki çalışmalar için bir başlangıç noktası olabilir. Makalenin Orijinal Adı ve Doi Numarası: Saioa Gómez-Zorita, Alfredo Fernández-Quintela, Arrate Lasa, Leixuri Aguirre, Agnes M. Rimando, María P. Portillo. Pterostilbene, a Dimethyl Ether Derivative of Resveratrol, Reduces Fat Accumulation in Rats Fed an Obesogenic Diet. Journal of Agricultural and Food Chemistry, 2014; 62 (33): 8371 DOI: 10.1021/jf501318b
    Pterostilbene, a Dimethyl Ether Derivative of Resveratrol, Reduces Fat Accumulation in Rats Fed an Obesogenic Diet


    Journal of Agricultural and Food Chemistry Abstract


    The current study aimed to demonstrate the effects of pterostilbene in rats fed an obesogenic diet. For this purpose, pterostilbene was administered at doses of 15 mg/kg body weight/day (PT15 group) or 30 mg/kg body weight/day (PT30 group) for 6 weeks. Pterostilbene reduced adipose tissue mass −15.1% (PT15) and −22.9% (PT30). In this tissue, it decreased malic enzyme (−39.4 and −49.5% for PT15 and PT30 groups, respectively) and fatty acid synthase (−45 and −53.4% for PT15 and PT30) activities. Acetyl-CoA carboxylase activity was reduced and AMPK activity was increased only in the PT30 group. In the liver, pterostilbene (PT30) reduced malic enzyme (−29.5%) and glucose-6-P dehydrogenase (−43.2%) activities and increased carnitine palmitoyltransferase-1a (37.5%) and acyl-coenzyme A oxidase (42.5%) activities. This increased oxidative capacity was not associated with increased mitochondriogenesis. Among biochemical serum parameters, only insulin was modified by pterostilbene (−31.6%) in the PT15 group. The amounts of pterostilbene in serum and tissues from rats in the PT30 group were in not all cases 2-fold greater than those found in the PT15 group. In conclusion, pterostilbene shows antiobesity properties due, at least in part, to reduced lipogenesis in adipose tissue and increased fatty acid oxidation in liver.Yaban Mersini


    Erişkin Nörogenezisini ve Bilişsel İşlevi Etkileyen Beslenme Faktörleri

    Shibu M Pouloz1, Marshall G Miller1, tammy scott1, Barbara Shukitt Hale1
    Bağlantılar genişletmekÜcretsiz PMC makalesiSoyut


    Hipokampal beyin bölgesindeki kök hücrelerin farklılaşıp çoğalarak yeni nöronlara ve diğer yerleşik beyin hücrelerine dönüştüğü karmaşık bir süreç olan yetişkin nörojenezinin, diyet dahil birçok içsel ve dışsal faktörden etkilendiği bilinmektedir. Nörojenez, nöral plastisitede, beyin homeostazında ve merkezi sinir sisteminde bakımda kritik bir rol oynar ve yaşlanma ve beyin bozukluklarından etkilenen hasarlı beyin hücrelerinin bilişsel işlevini ve onarımını korumada çok önemli bir faktördür. Yaşlanma, nöroinflamasyon, oksidatif stres ve beyin hasarı gibi içsel faktörlerin yanı sıra yüksek yağlı ve yüksek şekerli diyetler, alkol ve opioid bağımlılığı gibi yaşam tarzı faktörleri yetişkin nörojenezini olumsuz etkiler. Tersine, kurkumin, resveratrol, yaban mersini polifenolleri, sülforafan gibi birçok diyet bileşeni, salvionik asit, çoklu doymamış yağ asitleri (PUFA'lar) ve polifenoller ve PUFA'larla zenginleştirilmiş diyetlerin yanı sıra kalori kısıtlaması, fiziksel egzersiz ve öğrenmenin yetişkin beyinlerinde nörojenezi indüklediği gösterilmiştir. Besinlerin ve diyet faktörlerinin yetişkin nörogenezini etkilediği altta yatan mekanizmaların çoğu henüz belirlenmemiş olsa da, beslenme yaklaşımları yetişkin nörojenezini teşvik etmek ve nörodejeneratif hastalıklar ve bilişsel gerileme ile mücadele etmek için umut verici beklentiler sunmaktadır. Bu derlemede, beslenme faktörlerinin yetişkin nörogenezini değiştirmedeki rolünü destekleyen kanıtları ve yaşlanma sırasında bilişsel işlevi koruma potansiyellerini özetliyoruz. yetişkin beyinlerinde nörogenezi indüklediği gösterilmiştir. Besinlerin ve diyet faktörlerinin yetişkin nörogenezini etkilediği altta yatan mekanizmaların çoğu henüz belirlenmemiş olsa da, beslenme yaklaşımları yetişkin nörojenezini teşvik etmek ve nörodejeneratif hastalıklar ve bilişsel gerileme ile mücadele etmek için umut verici beklentiler sunmaktadır. Bu derlemede, beslenme faktörlerinin yetişkin nörogenezini değiştirmedeki rolünü destekleyen kanıtları ve yaşlanma sırasında bilişsel işlevi koruma potansiyellerini özetliyoruz. yetişkin beyinlerinde nörogenezi indüklediği gösterilmiştir. Besinlerin ve diyet faktörlerinin yetişkin nörogenezini etkilediği altta yatan mekanizmaların çoğu henüz belirlenmemiş olsa da, beslenme yaklaşımları yetişkin nörojenezini teşvik etmek ve nörodejeneratif hastalıklar ve bilişsel gerileme ile mücadele etmek için umut verici beklentiler sunmaktadır. Bu derlemede, beslenme faktörlerinin yetişkin nörogenezini değiştirmedeki rolünü destekleyen kanıtları ve yaşlanma sırasında bilişsel işlevi koruma potansiyellerini özetliyoruz.

    Anahtar Kelimeler: yaşlanan beyin; bilişsellik; hipokampal nörogenez; nörodejenerasyon; polifenoller; kök hücreler.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      GENÇLEŞİTİRİR, Yaşlanmayı geciktirir YABAN MERSİNİ, Çünkü yaşlanmaya sebep olan Genleri yavaşlatır


      Nutrasötiklerin Üretiminde Kullanım İçin Bir Antioksidan Kaynağı Olarak Karadağ'dan Yabani Yaban Mersini ( Vaccinium myrtillus L., Ericaceae)

      Snezana Brasanac-Vukanovic , 1 Jelena Mutic , 2 Dalibor M. Stankoviç , 2, 3 Ivana Arsiç , 4 Nada Blagojeviç , 1 Vesna Vukasinovic-Pesiç- , 1 ve Vanja M. Tadiç 5, *
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler

      Ek Malzemeler
      Git: Öz
      Bu çalışmanın amacı, Karadağ'dan yaban mersini bitkilerinin kimyasal bileşimi ve antioksidan aktivitesi arasındaki ilişkiyi belirlemektir. Meyve ve yaprak ekstraktlarında toplam fenolik, tanen, flavonoid, prosiyanidin ve antosiyanin içerikleri spektrofotometrik yöntemler kullanılarak belirlenirken, metal içeriği ölçümleri İndüktif Eşleştirilmiş Atomik Emisyon Spektrometresinde gerçekleştirilmiştir. Ana fenoliklerin kalitatif ve kantitatif analizleri HPLC ile gerçekleştirilmiştir. İncelenen ekstraktlarda en bol bulunan fenolik klorojenik asit olurken, bunu protokateşik asit takip ederken, resveratrol, izokersetin, quesetin ve hiperosid de önemli miktarlarda mevcuttu. Antioksidan potansiyeli, aynı zamanda gerçekleştirilen döngüsel voltametri testlerine uygun olarak iki in vitro test (FRAP ve DPPH) kullanılarak değerlendirildi.

      Anahtar Kelimeler: Vaccinium myrtillus , fenolik bileşikler, metaller, antioksidan aktivite, döngüsel voltametri, temel bileşen analizi
      Git: 1. Giriş
      Fenolik bileşikler, fenolik asitler gibi basit moleküllerden tarif edilen tanenler gibi yüksek derecede polimerize maddelere kadar değişen 8000'den fazla fenolik yapıya sahip, bitkilerin en bol bulunan ikincil metabolitleridir. Fenoliklerin antioksidan aktivitesinin esas olarak indirgeyici ajanlar, hidrojen donörleri ve singlet oksijen söndürücüler olarak hareket etmelerine izin veren redoks özelliklerinden kaynaklandığı bilinmektedir [ 1 ]. Fenolik bileşiklerin çok çeşitli oksidatif hasarın [gelen koruma hücresel sistemlerin yardımcı olabilir 2]. Fenolikler açısından doğal olarak zengin bitkilerin artan tüketimi, kardiyovasküler hastalıklar, diyabet, kanser ve obezitenin önlenmesi ile ilişkili olabilir. Faydalı insan sağlığı etkilerinin yanı sıra, bitki dokularında bulunan fenolik bileşikler, bakteri ve mantar enfeksiyonlarına, UV radyasyonuna, fiziksel hasara vb. karşı bitki korumasında aktif rol alır.

      Fenolik bileşik tüketimi, kronik hastalık gelişimi için daha düşük risk ile ilişkilidir. Diyet karbonhidratlarının glikoza sindirilmesinden sorumlu anahtar enzimler olan α-glukozidaz ve α-amilaz aktivitelerini inhibe edebilirler. Polifenoller karbonhidrat ve lipid metabolizmasını modüle etmede rol oynarlar, hiperglisemi, dislipidemi ve insülin direncini azaltabilir, insülin sekresyonunu uyarabilir, β-hücre fonksiyonunu iyileştirebilir, yağ dokusu metabolizmasını iyileştirebilir ve oksidatif stresi, strese duyarlı sinyal yollarını ve inflamatuar süreçleri hafifletebilir. Bu bileşikler ayrıca kardiyovasküler hastalık, nöropati, nefropati ve retinopati dahil olmak üzere diyabetin uzun vadeli komplikasyonlarının gelişmesini de önleyebilir [ 3 ].

      Vaccinium myrtillus L. (yaban mersini), Ericaceae familyasının bir üyesidir. Yaban mersini, diyabet tedavisi için en güvenilir bitkisel ilaçlardan biridir [ 4 ]. 685 İtalyan herbalists üzerinde yapılan bir araştırma, yaban mersini glisemik kontrolün iyileştirilmesi [tavsiye bitkisel ilaçlar listesinde dördüncü sırada 5]. Geleneksel olarak, insanlar yaban mersini yapraklarını kan şekerini kontrol etmek için kullanmışlardır, bunların en önemlileri flavonoidler, fenolik asitler, tanenler ve stilbenler olmak üzere çeşitli fenolik bileşiklere atfedilebilir. Öte yandan, meyveler kan şekerini düşürmez, ancak bileşenleri kan damarlarının gücünü ve bütünlüğünü iyileştirmeye ve diğer hastalıkların yanı sıra diyabet ile ilişkili hasarlarını azaltmaya yardımcı olabilir. Bu etki, toplam fenoliklerin yaklaşık %90'ını temsil eden antosiyaninlerden kaynaklanmaktadır. Ek olarak, yaban mersini için bildirilen yüksek antioksidan potansiyelinden fenolik bileşikler sorumlu olabilir [ 6 ]. Yaban mersininin antidiyabetik potansiyeli, içinde bulunan mineral elementlere de atfedilebilir [ 7 , 8 , 9].

      Literatür verileri, bitki ekstraktlarındaki fenolik bileşiklerin konsantrasyonunun ve profilinin, çoğunlukla ekstraksiyon işleminde kullanılan çözücülerin polaritesine, farklı bitkilerin biyolojik habitatlarına ve yetiştirme koşullarına ve ayrıca bu bileşiklerin doğasına bağlı olduğunu ortaya koymaktadır. fenolikler karbonhidratlar ve proteinler gibi diğer bitki bileşenleri ile oluşabilir [ 10]]. Yabanmersini meyveleri kimyasal profilleri ve/veya antioksidan kapasiteleri açısından başka yerlerde tanımlanmış olmasına rağmen, araştırılan antioksidan özellikleri ile farklı yabanmersini yaprağı ekstrelerinin kimyasal profili arasındaki ilişkiye odaklanan çok fazla araştırma yoktur. Döngüsel voltametri, farklı türdeki numunelerin antioksidan aktivitesinin hızlı izlenmesi için kullanışlı bir analitik prosedürdür. Antioksidan kapasite taraması ve değerlendirmesi için geliştirilen elektrokimyasal tekniklerin hızlı ve hassas olduğu kanıtlanmıştır, çeşitli matrislerin analizine izin verir, karmaşık numune ön işlemine gerek kalmadan ve nispeten düşük maliyetle. Yöntemler, antioksidan kapasite olarak etiketlenen akım dalgasının altındaki alandan elde edilen tepe akım yoğunluğundan veya yükün değerinden yararlanır [ 11].].

      Ekstraksiyon için uygun çözücünün seçiminde çeşitli faktörler dikkate alınmalıdır. Yani, kovalent olmayan etkileşimler, molekül hareketlerinin hızı ve çözücü akışının daha yüksek sıcaklıkta hızlanması, ekstrakte edilen fenolik bileşiklerin içeriğini artırabilir [ 12 ]. Öte yandan, kullanılan çözücünün kaynama noktasındaki sıcaklık ve daha yüksek sıcaklıkta sıvı yoğunluğunun azalması fenolik bileşiklerin ekstraksiyon verimini düşürebilir. Bu nedenle, geleneksel olarak oluşturulan iyi etkileri sağlamada tatmin edici olabilecek polifenolik bileşim açısından zengin özler elde etmek için uygun koşulları oluşturmak için farklı ekstraksiyon yöntemleri ve farklı polariteye sahip çözücüler kullandık.

      Bu bağlamda, mevcut çalışmanın amacı, infüzyon, maserasyon ve Soxhlet ekstraksiyonu ile elde edilen yaban mersini meyveleri ve yaprak ekstraktlarının kimyasal bileşimi ve antioksidan aktivitesi arasındaki korelasyonu belirlemektir. Su bitkisi infüzyonlarının genellikle hastalık zamanlarında geleneksel bitkisel preparatların hazırlanmasında kullanıldığını hesaba katarak, ancak endüstriyel ölçekli üretimin genellikle çözücü olarak etanol kullanması gerçeğine göre biz de Soxhlet ekstraksiyonunu tam kapsamlı bir ekstraksiyon yöntemi olarak kullandık. bitki materyali. Ek olarak, Soxhlet ekstraksiyonunun yüksek sıcaklık gerektirdiği ve termolabil maddeler için dezavantajlı olabileceği akılda tutularak, ortam sıcaklığında ekstraksiyon olarak maserasyon da kullanılmıştır. Bu nedenle, bu çalışmanın amacı toplam fenolik (TP), yaban mersini yaprağı ve meyve özlerindeki toplam tanen (TT), toplam flavonoid (TF) içeriği ve mineral bileşimi. İncelenen numunelerde bulunan başlıca fenolik bileşikleri belirlemek ve ölçmek için bir HPLC yöntemi kullanıldı. Antioksidan aktivite ile fenolik bileşik içeriği ve ayrıca araştırılan ekstraktların metal içeriği arasındaki ilişkiyi değerlendirmek için iki yaygın antioksidan aktivite tahlili (DPPH ve FRAP) uygulandı. Ayrıca, antioksidan özelliklerin tahmini için güvenilir bir yöntem olarak döngüsel voltametri de gerçekleştirilmiştir. Araştırılan ekstraktların kimyasal bileşimi ve antioksidan özellikleri arasındaki ilişkiyi kurmak için temel bileşen analizi kullanıldı. İncelenen numunelerde bulunan başlıca fenolik bileşikleri belirlemek ve ölçmek için bir HPLC yöntemi kullanıldı. Antioksidan aktivite ile fenolik bileşik içeriği ve ayrıca araştırılan ekstraktların metal içeriği arasındaki ilişkiyi değerlendirmek için iki yaygın antioksidan aktivite tahlili (DPPH ve FRAP) uygulandı. Ayrıca, antioksidan özelliklerin tahmini için güvenilir bir yöntem olarak döngüsel voltametri de gerçekleştirilmiştir. Araştırılan ekstraktların kimyasal bileşimi ve antioksidan özellikleri arasındaki ilişkiyi kurmak için temel bileşen analizi kullanıldı. İncelenen numunelerde bulunan başlıca fenolik bileşikleri belirlemek ve ölçmek için bir HPLC yöntemi kullanıldı. Antioksidan aktivite ile fenolik bileşik içeriği ve ayrıca araştırılan ekstraktların metal içeriği arasındaki ilişkiyi değerlendirmek için iki yaygın antioksidan aktivite tahlili (DPPH ve FRAP) uygulandı. Ayrıca, antioksidan özelliklerin tahmini için güvenilir bir yöntem olarak döngüsel voltametri de gerçekleştirilmiştir. Araştırılan ekstraktların kimyasal bileşimi ve antioksidan özellikleri arasındaki ilişkiyi kurmak için temel bileşen analizi kullanıldı. incelenen ekstraktların metal içeriğinin yanı sıra, iki yaygın antioksidan aktivite tahlili -DPPH ve FRAP- uygulandı. Ayrıca, antioksidan özelliklerin tahmini için güvenilir bir yöntem olarak döngüsel voltametri de gerçekleştirilmiştir. Araştırılan ekstraktların kimyasal bileşimi ve antioksidan özellikleri arasındaki ilişkiyi kurmak için temel bileşen analizi kullanıldı. incelenen ekstraktların metal içeriğinin yanı sıra, iki yaygın antioksidan aktivite tahlili -DPPH ve FRAP- uygulandı. Ayrıca, antioksidan özelliklerin tahmini için güvenilir bir yöntem olarak döngüsel voltametri de gerçekleştirilmiştir. Araştırılan ekstraktların kimyasal bileşimi ve antioksidan özellikleri arasındaki ilişkiyi kurmak için temel bileşen analizi kullanıldı.

      Git: 2. Sonuçlar ve Tartışma
      2.1. Ekstrelerdeki Verim, Polifenolik Bileşiklerin İçeriği ve Mineral Bileşimi
      2.1.1. Ekstraksiyonların Verimi
      Bitki materyalinden ekstraksiyon verimi, değişen polaritelere sahip solventlerin tipine, ekstraksiyon süresi ve sıcaklığına, numune-çözücü oranına ve ayrıca numune bileşenlerinin kimyasal bileşimine ve fiziksel özelliklerine bağlıdır. İncelenen ekstraktların hazırlanması için, çevre açısından iyi huylu ve insan sağlığına nispeten güvenli olarak kabul edilebilecekleri için su ve %70 etanol seçilmiştir. Pop ve ark. [ 13 ], ekstraksiyon için %80 etanol kullanıldığında en yüksek verimi sağladığını gösterdi, endüstriyel ölçekte ekstraksiyonun genellikle bu solvent ile yapıldığını akılda tutarak araştırmamızda %70 etanol kullandık. Geleneksel uygulamaların su infüzyonlarını içerdiği göz önüne alındığında, deneyimizde kullanılan ikinci çözücü su olmuştur.14 ].

      Gösterilen sonuçlara göre Şekil 1, bir Soxhlet ekstraksiyonunda %70 etanol kullanıldığında ekstraksiyon verimi en yüksekti (MFES %61.35, MLES %33.96). Aynı çözücüyle, ancak maserasyon uygulanarak (MFEM %13.10, MLEM %16.09) önemli ölçüde daha düşük verimler elde edildi. Çözücü olarak su ile elde edilen ekstraksiyon verimi, maserasyon ile elde edilen verimden (%70 etanol ile) daha yüksekti, ancak Soxhlet ekstraksiyonu ve %70 etanol ile karşılaştırıldığında daha düşüktü (sırasıyla MFEI ve MLEI'de %50.25 ve %23.51). Aynı solventin kullanıldığı soğuk maserasyona kıyasla Soxhlet ekstraksiyonunun avantajı, ekstraksiyon sıcaklığının arttırılmasının ekstraktiflerin çözünürlüğünü artırabileceğini ve bunun da verimde bir artışa yol açabileceğini göstermiştir. Suyun ekstraksiyonuna kıyasla %70 etanol ile Soxhlet ekstraksiyonundan kaynaklanan daha iyi kuru madde verimleri, muhtemelen bitki materyali tamamen tükenene kadar solventin sirkülasyon akışının bir sonucuydu. Etanol ile maserasyona kıyasla su ekstraksiyonu kullanıldığında daha iyi ekstraksiyon verimi, içinde istenen polifenolik bileşenlerin yanı sıra proteinler ve karbonhidratlar gibi diğer bileşenlerin de çözüldüğü bir çözücü olarak suyun daha düşük seçiciliğinin sonucu olabilir.
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı moleküller-23-01864-g001.jpg
      Ayrı bir pencerede aç
      Şekil 1
      Ekstraksiyon verimleri (%): MLES— Soxhlet tarafından elde edilen Myrtilli yaprak özü; MFES— Soxhlet tarafından elde edilen Myrtilli fructus özü; MLEM— Maserasyon yoluyla elde edilen Myrtilli yaprak özü; MFEM— Maserasyon yoluyla elde edilen Myrtilli fructus özü; MLEI— İnfüzyon yoluyla elde edilen Myrtilli folium özü; MFEI— İnfüzyonla elde edilen Myrtilli fructus özü.

      2.1.2. Toplam Fenolik İçerik
      Bu çalışmada, güncel literatür verilerinden antidiyabetik potansiyele sahip olduğu bilinen fenolik bileşiklerin varlığını araştırdık [ 15 , 16 ]. Bizim çalışmamızda (şekil 2a), yaprak ekstraktlarında bulunan TP içeriği, 173.19 ila 217.59 mg GAE/g (sırasıyla MLES ve MLEM'de) ve meyve ekstraktlarında 53.95 ila 69.32 mg GAE/g (sırasıyla MFEI ve MFEM) arasındaydı. ), Vučić ve diğerleri tarafından bulunan TP içeriği ile uyumluydu. [ 17 ]. Örneklerimizde, TT (şekil 2b) yapraklardaki (MLES'de %6,49'dan MLEM'de %9,17'ye) ve meyvelerdeki (MFEI'de 0,76'dan MFES'de %2,21'e) içerik, Roslon ve diğerleri tarafından elde edilen değerlerle iyi bir uyum içindeydi. [ 18 ]. TF (şekil 2c) meyve özlerindeki içerik MFEI'de %0.02'den MFEM'de %0.21'e kadar değişirken, yaprak özlerinde TF sırasıyla MLEI, MLEM ve MLES'in %1.46, %2.15 ve %2.38'ini temsil ediyordu. Literatür verileri yaban mersini yaprağı ve meyve özütlerindeki flavonoid konsantrasyonunun etanolde su özütlerinden daha yüksek olduğunu ortaya koydu [ 17 ]. Ayrıca aynı yazarlar, etanol ve su yaprağı ekstraktlarının meyve ekstraktlarına kıyasla TP ve TF bileşikleri açısından önemli ölçüde daha zengin olduğunu bulmuşlardır. Bu çalışmada sunulan veriler, diğer bazı literatür verilerinin yaban mersini yaprağı ekstraktlarındaki ortalama flavonoid içeriğinin önemli ölçüde daha düşük olduğuna işaret ettiği akılda tutularak, belirtilen literatüre benzerdi [ 18 ]. Prosiyanidinler ve antosiyaninler durumunda (şekil 2d) Meyve ekstraktlarında en yüksek içerik MFEM'de (sırasıyla %2,36 ve %0,06) bulunurken, en düşük içerik MFEI'de görülmüştür. İncelenen meyve ekstraktlarında belirlenen düşük antosiyanin içeriği, kuruduktan sonra antosiyanin içeriğinin azaldığını belirten yayınlanmış verilere uygundur [ 18 ]. Tüm ekstraktlar arasında TP, TT, TF içeriği açısından önemli fark gözlendi ( p < 0.01). Ayrıca prosiyanidinler ve antosiyaninler içeriğinde de meyve ekstraktlarında önemli farklılık bulunmuştur ( p < 0.01).
      Bir resmi, illüstrasyonu vb. tutan harici bir dosya. Nesne adı moleküller-23-01864-g002.jpg
      Ayrı bir pencerede aç
      şekil 2
      ( a ) toplam fenolik bileşiklerin (TP) içeriği ; ( b ) toplam tanenler (TT); ( c ) toplam flavonoidler (TF); ( d ) araştırılan ekstraktlardaki toplam prosiyanidinler ve toplam antosiyaninler.

      2.1.3. HPLC Analizi
      Araştırmamızda, on sekiz ayrı fenolik bileşiğin ve altı tanımlanmamış kuersetin, klorojenik asit ve stilbenoid türevinin varlığını doğruladık.Figür 3, Ek Malzemedeki Tablo S1 ). Bahsedilen fenolik bileşiklerin tanımlanması, bazı fenoliklerin tip 2 diyabet riskini azaltabileceği ve buna bağlı olarak artan mikrovasküler ve makrovasküler etki riskini dikkate alarak önemliydi [ 15 , 16 ]. Yaban mersini içinde bireysel fenolik bileşiklerin varlığı çeşitli çalışmalarda bildirilmiştir [ 2 , 5 , 6 , 14 , 19 , 20]. Fenolik bileşiklerin farklı içerikleri, farklı abiyotik çevresel faktörlerin (sıcaklık, su eksikliği, sulama ve besin stresi) veya kullanılan farklı ekstraksiyon prosedürlerinin etkisiyle açıklanabilir.
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı moleküller-23-01864-g003a.jpg
      Ayrı bir pencerede aç
      Bir resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı moleküller-23-01864-g003b.jpg
      Ayrı bir pencerede aç
      Figür 3
      İncelenen ekstraktların ve 325 nm'de tanımlanan fenolik bileşiğin HPLC kromatogramları: ( a ) MFES; ( b ) MFEM; ( c ) MFEI; ( d ) MLES; ( e ) MLEM; ( f ) MLEI. (* Gallik asit ve pirogallol ayrımı da MLES, MLEM ve MLEI'de 260 nm'de sunuldu). İncelenen ekstraktlarda fenolik asitlerin varlığı (Figür 3, Ek Malzemedeki Tablo S1 ) anlamlıydı. Bahadoran ve arkadaşlarının yaptığı çalışmaya göre bu bulgu önemli olabilir. [ 21], fenolik asitlerin, başlıca yaygın oral hipoglisemik ilaçlar olan metformin ve tiazolodinedion ile karşılaştırılabilir performansla glukoz alımını uyardığını ortaya koydu. Yaprak özütlerindeki baskın fenolik asit, MFEI ve MFEM'de sırasıyla 1.82 ila 2.48 mg/g arasında değişen içerikle, meyve özütlerinde de tanımlanan klorojenik asittir (MLEM'de 45.51'den MLEI'de 59.70 mg/g'ye). Tüm yaprak ve meyve özlerinde protokateşik asit tespit edildi (MLEM'de 1.40'tan MLEI'de 1.74 mg/g'ye ve MFEI'de 1.10'dan 1.42 mg/g MFEM'e). İncelenen tüm ekstraktlarda bulunan ancak daha düşük miktarlarda bulunan belirlenen polifenol asitler gallik, kafeik, p- kumarik, sinapik ve ferulik asittir. MFES'de neoklorojenik asit tespit edilmedi. Klorojenik içeriği, pMeyve özlerimizdeki kumarik, kafeik, gallik ve ferulik asitler, Slovenya menşeli meyveler için daha önce bildirilen verilerle karşılaştırıldığında daha yüksekti [ 6 ]. MFES ve MFEI arasındaki sinapik asit durumu hariç, tanımlanan tüm fenolik asit içeriğinde tüm ekstraktlar arasında önemli bir fark ( p < 0.01) bulduk. Fenolik asitlerin antidiyabetik potansiyeli, pankreas β-hücresinde GLUT2 ekspresyonunu artırarak ve ekspresyonu artırarak ve GLU4'ün translokasyonunu teşvik ederek glikoz taşıyıcı (GLUT) üzerindeki modülatör etkilerine bağlanabilir. Literatür verilerine dayanarak, fenolik asitler , Na + -Ca 2 +' yı inhibe ederek Na + ve Ca2 + iyonlarının akışını uyarabilir.eşanjör, böylece Ca2 + 'nın iç zara akışını uyararak membran depolarizasyonuna ve oksidatif fosforilasyon yoluyla adenosin trifosfat sentezinin aktivasyonuna yol açar. Bu mekanizma, insülin sekresyonunun uyarılmasını içeriyordu [ 15 ].

      Flavonoidler durumunda (Figür 3, Ek Malzemede Tablo S1 ), yaprak özlerinde izokersetin (MLES'de 9.92'den MLEI'de 16.20 mg/g'ye), kersetin (MLEI'de 1.16'dan MLES'de 7.27 mg/g'ye), rutin (4.73'ten MLEI'ye) MLEM'den MLEI'de 5,31 mg/g'a), hiperosid (MLEI'de 2,38'den MLEI'de 2,55 mg/g'ye), kaempferol-3- O -glukozit (MLES'de 1,38'den MLEI'de 1,60 mg/g'ye) ve kaempferol (0,03'ten) MLEI'de 0,26 mg/g'ye MLES'de). Bu flavonoid içeriğindeki önemli fark, yaprak ekstraktları arasında bulundu ( p < 0.01). Quercetin (MFEI'de 0,07'den 0,46 mg/g MFES'e), hiperosid (MFEI'de 0,17'den MFEM'de 0,34 mg/g'ye), kaempferol-3- O-glukoside (MFEI'de 0.05'ten MLEM'de 0.15 mg/g'ye kadar) ve izokersetin (0.31 mg/g'ye kadar) meyve özlerinde bulundu. MFEM ve MFEI örnekleri arasındaki izokersetin içeriği dışında, belirtilen tüm flavonoid içeriği meyve özleri arasında ( p < 0.01) önemli farklılık göstermiştir . Yaprak ve meyve ekstraktlarında belirlenen quercetin içeriği, Hokkannen ve ark. [ 22 ] ve Moze et al. [ 6 ]. Bljajic ve ark. tarafından elde edilen tarihe uygun olarak yaprak ekstraktlarımızda Kaempferol tespit edilmiştir. [ 19 ], Hokkanen ve ark. [ 22 ] bu bileşik bulunamadı. Meyve örneklerimizde rutin bulunmazken, bu flavonoid Sloven meyvelerinde tespit edilmiştir.6 ]. Piparo et al. [ 23 ], diyet karbonhidratlarının glikoza sindirilmesinden sorumlu olan insan a-amilazının inhibisyon potensinin, flavonoid iskeletinin B halkası üzerindeki hidroksil gruplarının sayısı ile ilişkili olduğunu gösterdi. İn vitro çalışmalardan elde edilen sonuçlar, kuersetin, izokersetin ve hiperosidin, 5'-adenozin monofosfatla aktive olan proteinin (AMPK) aktivasyonu ile ilişkili mekanizmalar yoluyla iskelet kasında GLUT4 translokasyonunu ve ekspresyonunu uyardığını göstermiştir [ 16 ]. Anti-diyabetik ilaçlar için ana hedef olan AMPK aktivasyonunda polifenollerin etkisinin metforminden 50-200 kat daha fazla olduğu bildirilmiştir [ 21].]. Rutin ve kaempferol ayrıca glikoz alımını uyarır. Karbonhidratların sindiriminden sorumlu enzimlerle etkileşime girme kabiliyetine sahip olduğu gösterilen numunelerimizde adı geçen flavon ve flavonollerin varlığı göz önüne alındığında, geleneksel olarak kullanılan yaban mersininin şeker hastalığının önlenmesi ve tedavisinde geleneksel olarak kullanılan yaban mersini olabileceği varsayılmıştır. gerekçesi var.

      Bizim çalışmamızda epikateşin literatür verileriyle uyumlu olarak sadece yaprak ekstraktlarında (MLEI'de 4,38'den MLES'de 5,75 mg/g'ye) bulunmuştur [ 22 ]. Daha önce yapılan araştırmalar yaban mersini meyvesinde de varlığını ortaya çıkarmıştı [ 6 ]. Pyrogallol sadece yaprak özlerinde tespit edildi (MLEM'de 2.45'ten MLES'de 3.46 mg/g'ye). Epikateşin ve pirogallol içeriğinde yaprak ekstraktları arasındaki önemli fark ( p < 0.01) fark edildi. Araştırmamız, hem yaprak hem de meyve özlerinde prosiyanidin varlığını ortaya çıkardı (Figür 3, Ek Malzemedeki Tablo S1 ). İncelenen tüm ekstraktlarda prosiyanidin içeriğinde önemli bir fark vardı ( p < 0.01). Epikateşin, pirogallol ve prosiyanidinlerin β-hücrelerini hiperglisemi ve oksidatif hasardan koruma yetenekleri olduğu biliniyordu. Fenoliklerin oral yoldan verilmesi, oksidatif stresin azaltılması, doğal antioksidan sistemin güçlendirilmesi ve lipid peroksidasyonunun inhibisyonu yoluyla serum glukozu ve β-hücresinin canlılığı üzerinde olumlu etkilere sahipti [ 21 ]. Bu çalışmada varlığı kontrol edilmesine rağmen, yaban mersininin de bu bileşiği içerdiği yayınlandığı için kateşini tespit etmedik [ 6 , 22 ].

      Tüm yaban mersini ekstraktlarında stilbenler tespit edildi (Figür 3, Ek Malzemedeki Tablo S1 ). Yaprak ekstraktlarındaki resveratrol içeriği MLEM'de 4.60'tan MLES'de 5.15 mg/g'ye kadar iken, meyvelerde MFEI'de 0.01 ila MFEM'de 0.07 arasında değiştiği bulundu. Resveratrol içeriğindeki tüm ekstraktlar arasındaki anlamlı fark fark edildi ( p < 0.01). Yabanmersini yapraklarında resveratrol varlığına dair bir rapor bulunmamaktadır. Ancak yaban mersini meyvelerindeki resveratrol içeriğine ilişkin önceki veriler bizimkinden daha düşüktü [ 6 ]. Bazı deneysel ve in vitro çalışmalar, resveratrolün glukoz toleransını iyileştirme, β-hücre kaybını hafifletme ve pankreatik adacıktaki oksidatif stresi azaltma potansiyeline sahip olduğunu göstermiştir [ 21 ].

      2.1.4. Metal İçeriği
      Sonuçlarımıza göre, su yaprak ve meyve ekstraktları (MFEI ve MLEI), etanol ekstraktlarından daha fazla Mn, Zn, K, Mg, Ca, Cr ve Cd içermektedir. Öte yandan etanolde Cu ve Pb içeriğinin su ekstraktlarına göre daha yüksek olduğu belirlendi. Su meyve özleri önemli miktarda Fe ve As içerirken, yapraklarda bu metaller MLEM'de en yüksek miktarda mevcuttu ( Ek Malzemede Tablo S2a ). Literatür verilerine dayanarak, incelenen ekstraktlarda belirlenen farklı metal miktarları ekstraksiyon ortamına bağlı olabilir. Ayrıca, ekstraksiyon işleminin süresi ve sıcaklığı, metal profilini ve miktarını büyük ölçüde etkilemiştir. Metallerin içeriği ( Ek Malzemedeki Tablo S2) yaprak özütlerinde, Reimann ve ark. tarafından araştırılan Kuzey ve Orta Avrupa ülkelerinden elde edilen yaprak özütleri için elde edilen sonuçlara benzerdi. [ 9 ] ve Kozanecka ve ark. [ 8 ]. Ek olarak, meyve özlerimizdeki metal konsantrasyonu, Demczuk ve Garbiec [ 7 ] tarafından sunulan sonuçlarla iyi bir uyum içindeydi .
      Yaban mersini incelenen örneklerde Cr, Mg, Zn, Mn, Fe, Cu, K ve Ca'nın önemli varlığı, yaban mersini yaprak ve meyvelerinin antidiyabetik potansiyeli olan ilaçlar olarak geleneksel uygulamaları ile bağlantılı olarak büyük önem taşıyabilir. Birçok araştırma çalışmasında makro ve eser elementlerin diabetes mellitus ile doğrudan ilişkileri gözlemlenmiştir [ 24 , 25 ]]. İnsülinin kan şekerini düşürme üzerindeki etkisinin Cr, Mg, V, Zn, Mn, Mo, Se, Fe, Cu, K ve Ca gibi bazı temel elementlerden etkilendiği bildirilmiştir. İnsülin etkisini artıran metallerin önerilen mekanizması, glikoz metabolizmasında yer alan enzim sistemleri için kofaktörler veya bileşenler olarak hizmet eden, insülin duyarlılığını artıran ve doku peroksidasyonunu önleyen antioksidanlar olarak görev yapan insülin alıcı bölgelerinin aktivasyonunu içerir. Ayrıca çeşitli iz ve makro elementler alter diabetes mellitus ve bu elemanların metabolizma patogenezinde belirli rolleri vardır ve [bu hastalığın ilerleme olabileceği bildirilmiştir 24]. Temel elementlerin eksikliği ve Pb, Cd ve As gibi toksik metallere maruziyetin artması durumunda vücut, temel elementler yerine toksik kullanmaya eğilimlidir. Bu toksik metaller, diyabetik hastaların biyolojik örneklerinde yükselir ve organ fizyolojisi ve fonksiyonlarını bozarak bireyin sağlık durumunu olumsuz etkiler [ 25 ].

      En yüksek K, Ca ve Mg konsantrasyonu MLEI'de saptanırken, en düşük konsantrasyon MFEM'deydi. K konsantrasyonu 6.01 ± 0.10 ila 17.22 ± 0.02 mg/g, Ca 0.383 ± 0.005 ila 5.94 ± 0.02 mg/g ve Mg 0.397 ± 0.007 ila 3.83 ± 0.02 mg/g idi. Mg, Ca ve K içeriğinde tüm ekstraktlar arasında önemli fark vardı ( p < 0.01). Bu makro elementler, insülin duyarlılığını, yanıt verme yeteneğini ve insülin salgılanmasını iyileştirdi. Ca akısındaki herhangi bir değişiklik, β-hücre salgılama fonksiyonu üzerinde olumsuz etkilere sahip olabilirken, K tükenmesi, glikoz toleransının azalmasına neden olabilir [ 24].]. Mg, hücre zarının glikoz taşıma mekanizmalarında ve karbonhidrat oksidasyonunda çeşitli enzimlerde bir kofaktördür. Aynı zamanda, insülin salgılanmasında, insülinin tirozin kinazı aktive etme kabiliyetini bağlamada ve arttırmada çoklu seviyelerde yer alır [ 25 ]. Bu nedenle, sonuçlarımız, incelenen ekstraktlarda belirtilen makro elementlerin önemli bir miktarının metabolik süreç bozulmalarında yararlı etkileri olabileceğini göstermiştir.

      Çalışmamızda Mn konsantrasyonları, MFES'de 42.85 ± 0.10'dan MLEM'de 1210 ± 2 µg/g'ye, Fe'nin MFEM'de 5.90 ± 0.05'ten MFEI'de 37.6 ± 0.2 µg/g'ye, Cu konsantrasyonları MFEI'de 1.513 ± 0.010'a kadar değişmektedir. MLES'de 33,31 ± 0,09 µg/g, Zn MFEM'de 6,281 ± 0,007'den MLEI'de 31,48 ± 0,04 µg/g'ye ve Cr, MLEM'de 0,123 ± 0,002'den MLEI'de 1,11 ± 0,03 µg/g'ye. Bu esansiyel metallerin içeriğinde tüm ekstraktlar arasında önemli bir fark vardır ( p < 0.01). Mn bunların daha sonraki kullanım [glukoz ile glukoneojenez içine çeşitli karbonhidrat olmayan bileşiklere dönüştürülmesi önemli bir rol oynar piruvat karboksilaz bir faktör, bir 25]. Cr, kas hücrelerinde GLUT4 translokasyonunu yukarı regüle ederek insülin sinyal yollarını ve metabolizmayı uyararak insülin ve kan glukoz seviyelerini düzenlerken, Cu mitokondrinin elektron taşıma zincirinde yer alan sitokrom oksidazı aktive eder [ 25 ]. Zn taşıyıcısının pankreas β-hücrelerinden insülin sentezi ve salgılanmasında rol oynayan anahtar bir protein olduğu tespit edilmiştir [ 25].]. Bu mineral elementlerden elde edilen sağlık yararları, eksikliklerinin hastalığın gelişimi ve ilerlemesinde ek bir risk faktörü olarak göründüğünün açık bir göstergesidir ve diyabetes mellitus ve komplikasyonlarının patogenezine katkıda bulunur. Bunların doldurulması, glisemik kontrol ve diğer risk faktörlerinin kontrolü ile birlikte diyabetin ilerlemesinin ve komplikasyonlarının önlenmesinde etkili bir terapötik müdahale olabilir. Bu nedenle, bu çalışma, incelenen ekstraktlarla ilişkili belirlenmiş mineral elementlerin gösterilen kayda değer miktarları nedeniyle, glikoz düşürücü ajanlar olarak antidiyabetik bitkilerin etkisinin daha iyi anlaşılmasına yardımcı olabilir.

      Örneklerimizde belirlenen toksik metaller Pb, Cd ve As, diabetes mellitus ve komplikasyonlarının gelişimi ve ilerlemesinde ek risk faktörü olabilir. Dünya Sağlık Örgütü (WHO) tarafından tıbbi bitkilerde Cd ve Pb için izin verilen limit, As için bir limitin henüz WHO tarafından belirlenmediği göz önünde bulundurularak, sırasıyla 0,3 µg/g ve 10 µg/g idi [ 26 ]. Hesaplanan değerler, tüm araştırma ekstraktlarının bu metalleri limitlerin altında biriktirdiğini göstermiştir ( Ek Malzemede Tablo S2a ). Bulgularımıza göre yaban mersini özlerinin toksikolojik bir riski yoktu. Pb ( p ) içeriğinde tüm ekstraktlar arasında önemli fark vardı.< 0.01). Öte yandan, MFES ve MFEM arasında As içeriğinde ve tüm meyve ekstraktları arasında Cd içeriğinde önemli bir fark bulamadık.

      İnfüzyon/Soxhlet ekstraksiyonu/maserasyonu ile elde edilen yaprak/meyve ekstraktlarının ortalama tüketimi ve elde edilen ortalama verim (Şekil 1), Avrupa Ekonomik Topluluğu normlarına göre günlük mineral alımını (DMI) hesaplamak için 1 g yaban mersini meyvesi ve yaprak özleri aldık [ 27 ]. Sunulan sonuçlar, araştırılan ekstraktların sadece antioksidan fenoliklerin değil, potansiyel bir kaynak olabileceğini ortaya koydu.şekil 2), ancak Mn'den ( Tablo S2b, Ek Malzeme ) değil, aynı zamanda bir nutrasötikler / fonksiyonel gıda. Ayrıca bulgularımıza göre ( Tablo S2b, Ek Materyal ), yaban mersini özlerinin toksikolojik bir riski yoktu.

      2.2. Antioksidan Aktivite
      Reaktif oksijen türleri (ROS) ve reaktif nitrojen türleri (RNS), mitokondriyal solunum zincirinin aktivitesi ve iltihaplanma gibi normal hücresel süreç tarafından sürekli olarak üretilen yüksek oranda reaktif oksitlenmiş moleküllerdir. ROS, süperoksit (O 2− ) ve hidroksil (OH) gibi serbest radikalleri ve hidrojen peroksit (H 2 O 2 ) gibi serbest olmayan radikalleri içerir . Reaktif nitrojen türleri, nitrik oksit (NO) ve nitrojen dioksit (NO 2 − ) gibi serbest radikalleri ve peroksinitrit (OONO − ) gibi serbest olmayan radikalleri içerir.). Oksidatif stres, antioksidan ve prooksidan dengesindeki herhangi bir bozukluk olarak tanımlanabilir ve antioksidan savunma sistemi tarafından reaktif türlerin (RS) üretiminin artması ve/veya azalması nedeniyle oluşur. Oksidatif hasarı önlemek için fazla RS'nin hücrelerden elimine edilmesi önemlidir. Hücrelerin veya dokuların oksidatif strese dayanma yeteneği, büyük ölçüde, genel antioksidan savunma sisteminin, ROS'un fizyolojik rollerinden ödün vermeden fazla RS'yi temizleme etkinliğine bağlıdır [ 28].]. Antioksidan enzimler arasında süperoksit dismutaz (SOD), glutatyon peroksidaz (GPx) ve katalaz (CAT) bulunur ve bunların tümü bu oksidanları söndürmede ve hücresel hasarı önlemede hayati bir rol oynar. Bu antioksidan enzimlerin seviyesi, diyabette komplikasyonların gelişimi ile ilişkilidir. Bu, en düşük içsel antioksidan savunma seviyelerine sahip olan beta adacıkları için özellikle alakalı ve tehlikelidir [ 29 ]. Diyet antioksidanları olarak bitki polifenolleri, karbonhidrat metabolizmasına katılan enzimlerin konsantrasyonunu normalleştirebilir ve böylece oksidatif değişiklikleri önleyebilir [ 19 ].

      Antioksidan özelliklerini değerlendirmek için, çalışma prensiplerindeki farklılıklar göz önünde bulundurularak, araştırılan ekstraktların antioksidan özellikleri ile ilgili elde edilen sonuçların yorumlanmasında olası bir yanlışlığı önlemek için iki farklı analiz kullanılmıştır. Tüm ekstraktların antioksidan potansiyeli DPPH ve FRAP testleri kullanılarak değerlendirildi. DPPH tahlili, DPPH radikallerini temizlemek için hidrojen bağışlama kapasitesine dayanırken, FRAP tahlili, maddenin Fe 3 +' yı Fe 2+' ya indirgeme kabiliyetini ölçen elektron transferine dayalı bir testtir (sonuçlar mmol Fe 2+ /g olarak ifade edilmiştir). kullanılan ekstraktlar). Su özütlerine kıyasla etanol özütleri, DPPH tahlili ile ölçülen daha yüksek bir antioksidan aktiviteye sahipti (Şekil 4a). IC 50 etanol yaprakları özlerinin değerleri 2.92 sırasıyla 11.94 ug / Mles ve MLEI için mL arasında değişmektedir. Meyve hülasalar İS vardı 50 sırasıyla MFEM ve Mfel için, 105,46 ug / mL 50.82 aralığında değerler. Yaprakları özlerinin aktiviteleri pozitif kontrole benzer, BHT (IC 50 = 6 ug / ml), araştırılmıştır ekstraktlar yüksek antioksidan kapasitesine sahip olduğu anlamına gelir. İncelenen meyve özleri, yaprak özlerine kıyasla uygulanan testler ile ölçülen daha düşük antioksidan potansiyele sahipti (Şekil 4a). Bununla birlikte, araştırılan tüm ekstraktların değerlendirilen antioksidan aktivitesi, erken yayınlanmış verilerle karşılaştırıldığında daha yüksekti [ 2 ]. FRAP testi durumunda, (Şekil 4b), FRAP değerleri MLEI için en düşük (0,0011 mmol/g) ve MLEM için en yüksek (0,0030 mmol/g) iken, meyve özütlerinde FRAP değerleri MFES için 0,0003 mmol/g ile MFES için 0,0014 mmol/g arasında değişmektedir. MFEM, literatürde belirtilenden daha düşüktü [ 5 ].
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı moleküller-23-01864-g004.jpg
      Ayrı bir pencerede aç
      Şekil 4
      ( a ) DPPH tahlili ile ölçülen yaprak ve meyve özlerindeki antioksidan aktivite; ve ( b ) FRAP testi. DPPH değerlerinde ( p < 0.01) tüm ekstraktlar arasında anlamlı fark bulduk , FRAP değerlerinde ise MLES-MLEM, MLEM-MLEI, MFES-MFEM arasında anlamlı fark bulundu. Numunelerin etanol ve su ekstraktlarının antioksidan aktivitesinin tahmini için döngüsel voltametri de kullanıldı. Temsili voltamogramlar şurada gösterilmiştir:Şekil 5. Tüm numuneler, ilginç bir şekilde yüksek bir potansiyelde 0 ile 1,2 V arasındaki potansiyel penceresinde iyi tanımlanmış bir oksidasyon tepe noktası sağladı. Karşılık gelen herhangi bir katodik tepe noktasının yokluğu gözlemlendi. Yapılan ölçümler, MFEM ve MFES örneklerinin en düşük antioksidan kapasiteye sahip olduğunu ve benzer bir örnek grubu olarak gruplanabileceğini göstermiştir. Baskın fenolik bileşiğin yokluğunun not edildiği kromatografik ölçümlerle ( Ek Malzemedeki Tablo S1) benzerlik gözlendi . MLEI, MFEI, MLEM ve MLES olarak etiketlenen örnekler ise CV ve daha yüksek antioksidan aktivite kullanılarak benzer davranış göstermiştir. MLEI, MLEM ve MFES numuneleri için iyi tanımlanmış bir tepe noktasının varlığı, fenolik asitlerin daha yüksek mevcudiyetine bağlanabilir [ 30]]. Bu, kromatografik ölçümlerle elde edilen sonuçlara uygundu ( Ek Malzemedeki Tablo S1 ). Elektrokimyasal ölçümlerle antioksidan aktivite, genellikle iki bileşenden birinin görünür ve tanımlanmış oksidasyon pikleri sağladığı oksidasyon eğrisi altındaki alan olarak ifade edildiğinden ve eğri altındaki alana tüm bileşenlerin katkısı vardı [ 11 ]. Sunulan sonuçlara dayanarakŞekil 5, numunelerin antioksidan kapasitesi yaklaşık olarak tahmin edilebilir. Açıkça en yüksek antioksidan kapasiteler, toplam fenolik içerik ve DPPH ölçümleriyle iyi bir uyum içinde olan MLEI, MLEM ve MLES olarak etiketlenen örneklerde bulundu.şekil 2bir ve Şekil 4a). Aksine, MFES ve MFEM numuneleri için elektrokimyasal ölçümlerden en düşük sonuçlar elde edilmiştir. Benzer şekilde aynı numuneler için toplam fenolik içerik testi ile de aynı sonuçlar elde edilmiştir. Görülebileceği gibi, numune MFEI için elektrokimyasal ölçümler, orta bir antioksidan kapasite değeri ortaya çıkardı. Bu, numunenin doğası ve kullanılan testlerin seçimi ile açıklanabilecek diğer test ölçümleriyle uyumlu değildi.
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı moleküller-23-01864-g005.jpg
      Ayrı bir pencerede aç
      Şekil 5
      Örneklerin döngüsel voltamogramları. Çalışma elektrodu BDD elektrodu, destekleyici elektrolit olarak pH 7'de PBS.

      2.3. Polifenolik Bileşiklerin İçeriği ile Mineral Bileşimi ve Antioksidan Aktivite Arasındaki İlişki
      Yaprak ve meyve özlerinin antioksidan aktivitesini polifenolik ve mineral bileşimlerine göre analiz etmek ve elde edilen sonuçları özetlemek için temel bileşen analizi (PCA) yapıldı ( Ek Malzemede Şekil S2a,b ). Meyve özleri (R 2 = 0.7108) için DPPH ve FRAP değerleri ( Ek Malzemede Şekil S2b ve Tablo S3 ) arasında güçlü bir korelasyon bulduk , yaprak özlerinde ( Ek Malzemede Şekil S2a ve Tablo S3 ) aynı korelasyon bulundu. çok zayıf (R 2 = 0.0006). Açıklama, farklı bileşiklerin farklı mekanizmalar yoluyla antioksidan potansiyeline katkıda bulunabileceği, araştırılan ekstraktların kimyasal profili ile bağlantılı olabilir [ 31 ]. TF içeriği (arasında korelasyon ek materyal Şekil S2A ve Tablo S3 DPPH testi (R 'ile ölçülen) yapraklarda ve antioksidan etkinlik 2 sıkı bağlamak deneyleri ile korelasyonu zayıf iken = 0,8466), güçlü, olmak sadece R 2 = 0,1719 . Meyve özleri durumunda, (R, TF içeriği arasındaki korelasyon ve DPPH'yi gerçekleştirilir ve sıkı bağlamak deneyler güçlüydü 2 = 0.996 ve R 2 , sırasıyla = 0,6517). Yaprak ekstraktlarındaki TT içerikleri FRAP ile güçlü bir korelasyon sergilerken (R 2 = 0.882), DPPH değerleri durumunda ise zayıftı (R 2 = 0.104). Meyvelerdeki TT içeriği ile hem DPPH hem de FRAP değerleri arasındaki zayıf korelasyonlar belirlendi (R2 = 0,4898, R ' 2 , sırasıyla = 0,0434). Daha güçlü bir korelasyon antosiyaninler ve prosiyanidinler içeriği (meyve hülasalar için belirlenmiştir Ek Malzeme Şekil S2b ve Tablo S3 DPPH ile birlikte) (R, 2 = 0,8381 R 2 , sırasıyla = 0,5059) sıkı bağlamak değerlerine göre (R, 2 = 0,3085 R 2 = 0.0491, sırasıyla). Meyve özütlerindeki TP içeriği ( Ek Materyalde Şekil S2b ve Tablo S3 ) DPPH deneyleriyle (R 2 = 0.9972) güçlü bir korelasyon gösterirken, FRAP deneyleriyle korelasyon daha zayıftı (R 2 = 0.6617). Bulduk ( Ek Malzemede Şekil S2a ve Tablo S3) yaprak özütlerinde TP ve DPPH (R 2 = 0.4529) ve FRAP (R 2 = 0.5249) değerleri arasında orta düzeyde bir korelasyon . Güçlü bir korelasyonun gözlendiği örneklerde, örneklerde gözlenen antioksidan aktiviteden fenoliklerin büyük ölçüde sorumlu olduğu sonucuna varılabilir. Daha önceki bazı çalışmalara göre, fenolik bileşiklerin yapısında bulunan hidroksil gruplarının, gözlenen antioksidan aktiviteye katkıda bulunabileceği düşünülmüştür [ 32 , 33 ].]. Bununla birlikte, TP içeriği ile antioksidan aktivite arasında güçlü korelasyonların gözlemlenmediği numunelerde, sistemde bulunan ölçülen fenolikler dışında muhtemelen önemli miktarlarda antioksidanlar vardı. Ek olarak, antioksidan kapasite, ekstrakte edilen fenolik bileşikler arasındaki yapıya ve etkileşime de bağlı olabilir [ 34 ]. Yani minerallerin, özellikle de demirin, fenolik bileşiklerle kompleks oluşturarak antioksidan aktivitelerini etkilediği bilinmektedir [ 35 ].

      Fenolik asitlerin antioksidan aktivitesi, karboksil fonksiyonel gruba göre hidroksil gruplarının sayısına ve pozisyonlarına bağlıdır. Yüksek düzeyde antioksidan özellik gösteren trihidroksile gallik asit [ 32 ] durumunda olduğu gibi, artan hidroksilasyon derecesi ile artar ( Ek Malzemedeki Tablo S4 ). Yaprak ve meyve özlerinde tanımlanan fenolik asitler, çoğunlukla DPPH veya FRAP antioksidan aktivitesi ile iyi bir korelasyona sahipti (R 20,5641'den 1'e kadardı. İlginç bir şekilde, fenolik halka üzerindeki 3,4-dihidroksilasyon pozisyonu ve propenoik yan zincirdeki ek konjugasyon nedeniyle kafeik asidin daha yüksek antioksidan aktiviteye sahip olduğu beklentisine rağmen, rezonans yoluyla aromatik halka ve propenoik arasındaki elektron delokalizasyonunu kolaylaştırabilir. grubunda [ 33 ], elde edilen sonuçlar, incelenen meyve özleri örneklerindeki kafeik asit içeriği ile antioksidan aktivite (R 2 < 0.5) arasında zayıf bir korelasyon gösterdi . Burada dikkate alınması gereken bir diğer önemli nokta, ek bileşenlere bağlı olarak sistem içinde meydana gelebilecek olası sinerjistik veya antagonistik etkilerin yanı sıra fenolik bileşikler ve bitki matrisinin fiziksel ortamları arasındaki etkileşimler olabilir [36 ].

      Tespit flavonoidler türevleri ( ek materyal Tablo S4 yapraklar ve meyveler ekstrelerinde) DPPH veya FRAP (R ile güçlü bir korelasyon göstermiştir 2 0.7347 den 0.9903 idi). C2-C3 ve 3-OH, quercetin ve kaempferol'de çift bağlarla katekol parçasının kombinasyonunun son derece aktif bir serbest radikal süpürücü ajanlar sağlayabildiği akılda tutularak [ 32 ]. Çalışmamızda, yaprak ekstraktlarından elde edilen kersetin, antioksidan özellikler ile güçlü bir korelasyon (R 2 = 0.9355) sergiledi . İncelenen tüm özlerde resveratrolün ( Ek Malzemedeki Tablo S4 ) DPPH (R 2 ) ile güçlü bir korelasyonu olduğunu bulduk.0,7266 ila 0,998) idi. Resveratrol, serbest radikalleri yakalamak için alışılmadık derecede güçlü bir yetenek gösterir. Bu özellik, molekülde aromatik halkaların ve bir çift bağın varlığı kadar üç hidroksil grubunun varlığı ile ilgilidir [ 37 ]. Deneysel çalışmalar, hidroksil gruplarının çıkarılmasını veya -OCH ile yerine teyit 3 bileşiğinin antioksidan özellikleri bir kayba grup sonuçları. Bu (R FRAP tahlili ile pirogalol arasında güçlü bir korelasyon bulundu 2 0.8095 idi). Pirogallol ve gallik asit konjuge türevleri, daha yüksek moleküler ağırlıkları ve aromatik halkaların yüksek derecede hidroksilasyonu nedeniyle, yüksek antioksidan potansiyel sergileyebilir [ 38].], belirlenen antioksidan potansiyeli ile bulunan korelasyon tarafından doğrulandı.

      Meyve özütlerinde belirlenen tek tek metallerin ( Ek Malzemedeki Tablo S5) daha güçlü korelasyonu, FRAP değerlerine kıyasla DPPH değerleri için kurulmuştur. Aynı durum yaprak ekstraktlarında bulunan Mn, Cu, Mg, Ca, K ve Pb içerikleri için de geçerliyken, As, Cd, Ni, Cr, Zn ve Fe FRAP değerleri ile güçlü bir korelasyon sergilemiştir. Yaprakları özlerinin (in ek malzeme Tablo S5 ), (ayrı Pb) tespit metaller DPPH ve sıkı bağlamak testleri (R tarafından belirlenir antioksidan aktivitelerinin güçlü bir korelasyon vardı 2 , 0.9997 ile 0.7016 idi) en metalleri ise meyve hülasalar orta ya da zayıf bir korelasyon (R vardı 2 0.1599 den 0.672 idi).

      Yaprak ekstraktlarındaki toplam temel metal içeriği ile DPPH testi (R 2 = 0.8563) ile ölçülen antioksidan aktivite arasında güçlü bir korelasyon bulduk ( Ek Malzemede Şekil S2a ve Tablo S6 ), meyve ekstraktlarında korelasyon orta düzeydeydi. (R, 2 = 0,5219). Öte yandan, yaprak ekstraktlarında belirlenen toksik metaller ile FRAP değerleri arasında yüksek bir korelasyon gözlenirken (R 2 = 0.8933) meyve ekstraktlarındaki toksik metal içeriği ile FRAP ve DPPH arasındaki korelasyon benzer (R 2 = 0.9221) bulundu.

      Git: 3. Malzemeler ve Yöntemler
      3.1. Malzemeler
      3.1.1. kimyasallar
      Analitik dereceli reaktifler asetat tamponu, 2,4,6-tripiridil-s-triazin (TPTZ), HCl, FeCl 3 , Folin-Ciocalteu reaktifi,2,6-di- tert -butil-4-metilfenol (BHT), n - bütanol (BuOH), aseton, etil asetat, sodyum bikarbonat, 1,1'-difenil-2-pikrilhidrzil (DPPH), mutlak etanol (%96, v / v ) ve metanol Sigma-Aldrich'ten (St. Louis, MO, ABD). Asetonitril, su ve metanol (HPLC derecesi) Merck'ten (Darmstadt, Almanya) satın alındı. Referans HPLC standartları, gallik asit, pirogallol, protokateşik asit, klorojenik asit, prosiyanidin B2, vanilik asit, kafeik asit, siringik asit, epikateşin, p-kumrik asit, ferulik asit, sinapik asit, rutin, hiperosid, izokersetin, kaempferol-3- O -glukosid, resveratrol, kuersetin, kaempferol (saflık ≥%99) Extrasynthese'den (Genay, Fransa) satın alındı.

      Metal bileşimi için, tüm kimyasallar analitik saflıktaydı ve Merck tarafından sağlandı. Tüm cam% 10 nitrik asit çözeltisi batırılmış 3 en az 12 saat boyunca ve damıtılmış su ile iyice durulanır. Ultra saf su, bir Milli-Q sisteminden iki kat deiyonize su geçirilerek hazırlandı. ICP-OES ölçümleri için ara çok elemanlı standart çözeltiler hazırlamak için 1.000 g/L majör ve eser element içeren çok elementli stok solüsyonu (Alfa Aesar, Thermo Fisher Scientific, Waltham, MA, ABD) kullanıldı. Elektrokimyasal ölçümler için destekleyici elektrolitin hazırlanmasında kullanılan monosodyum fosfat ve disodyum fosfat (Merck, Darmstadt, Almanya) analitik saflıktaydı ve alındığı gibi kullanıldı.

      3.1.2. Bitki Malzemesi
      Bu çalışmada kullanılan materyal Karadağ, Bjelasica Dağı'nda toplanan kurutulmuş bitki parçalarıdır (yaban mersini meyveleri ve yaprakları). Kupon numuneleri (No VMF_121215 ve VML_111215), tanımlamanın yapıldığı Belgrad Üniversitesi Eczacılık Fakültesi Botanik Bölümü'nde saklandı. Ekstraksiyondan kısa bir süre önce, numuneler bir elektrikli değirmende öğütüldü (tüm numuneler toz haline getirildi, partiküllerin boyutu 355, Ph. Eur. 9 tarafından tavsiye edildiği gibi).

      3.2. Ekstraksiyon ve Analitik Yöntemler
      3.2.1. Maserasyon, İnfüzyon ve Soxhlet Ekstraksiyonu
      Öğütülmüş meyve ve yaprakların maserasyon ve infüzyon işlemleri, sırasıyla MLEM- Myrtilli folium ve MFEM- Myrtilli fructus özütleri ve MLEI- Myrtilli folium ve MFEI- Myrtilli fructus özütleri sağlayarak aşağıda açıklanan işlemlere göre gerçekleştirilmiştir. Klasik sürekli yöntemi olan Soxhlet'i uygulayarak ekstraksiyon, MLES- Myrtilli folium ve MFES- Myrtilli fructus özütlerini sağladı .

      Maserasyon
      Öğütülmüş bitki materyali (50 g, meyveler ve yapraklar, her biri) 300 mL %70 etanol ile karıştırıldı. Ekstraksiyon, ara sıra karıştırılarak oda sıcaklığında gerçekleştirildi. 72 saat sonra, numune filtre kağıdından süzüldü ve çökelti, 20 mL taze çözücü ile yeniden özümlendi. 48 saat sonra işlem tekrarlandı. Kombine süpernatanlar kuruyana kadar buharlaştırıldı. Ekstraksiyon verimi yüzde olarak ifade edildi.

      Sokslet Ekstraksiyonu
      On g bitki materyali (meyveler ve yapraklar), bir Soxhlet aparatındaki bir Soxhlet yüksüğüne yerleştirildi ve solventin kaynama noktasında 72 saat boyunca 325 mL solvent (%70 etanol) ile özümlendi. Bundan sonra numune oda sıcaklığına soğutuldu ve kuruyana kadar buharlaştırıldı. Ekstraksiyon verimi yüzde olarak ifade edilir.

      infüzyon
      10 g bitki materyali (meyveler ve yapraklar) üzerine kaynar su (150 mL) döküldü, saat camı ile kapatıldı ve 2 dakika daha kaynamaya bırakıldı. Bu süreden sonra kap ısıtıcıdan çıkarılarak üzeri kapatılarak 30 dakika bekletilmiştir. Numune filtre kağıdından süzüldü ve sonra kuruyana kadar buharlaştırıldı. Ekstraksiyon verimi yüzde olarak ifade edilir.

      3.2.2. Toplam Fenolikler, Tanenler, Flavonoidler, Antosiyaninler ve Prosiyanidinler İçeriğinin Belirlenmesi
      Toplam fenolik içeriği Folin-Ciocalteu yöntemi ile belirlendi. Araştırılan MLEI, MLEM, MLES, MFEI, MFEM ve MFES (sırasıyla 0.57, 0.49, 0.56, 0.51, 0.55, 0.62 mg/mL) ekstraktlarının yüz mikrolitre MeOH solüsyonları 0.75 mL Folin-Ciocalteu reaktifi ile karıştırıldı ( önceden distile su ile 10 kat seyreltilmiş) ve 22 °C'de 5 dakika beklemeye bırakılmıştır; Karışıma 0.75 mL sodyum bikarbonat (60 g/L) solüsyonu ilave edildi. 22°C'de 90 dakika sonra, 725 nm'de absorbans ölçüldü. Standart bir eğrinin kalibrasyonu için gallik asit (0-100 mg/L) kullanıldı. Kalibrasyon eğrisi, r > 0.99'da lineer regresyon gösterdi ve sonuçlar, bitki ekstraktlarının kuru ağırlığının (mg GAE/g DW) gramı başına miligram gallik asit eşdeğeri olarak ifade edildi. Toplam fenoliklerin içeriği, üç tayinin ortalamasını sundu.

      TT'nin yüzde içeriği, Avrupa Farmakopesi 9.0'da [ 39 ] açıklanan yöntem kullanılarak hesaplandı . Kısaca, incelenen ekstraktlardan hazırlanan kaynatmalar, post tozu ile muameleden sonra ve muamele edilmeden alkalin ortamda fosfomolibdotungstik reaktif ile muamele edildi. Absorbans, bir HP 8453 UV-VIS spektrofotometresi (Agilent Technologies, Santa Clara, CA, ABD) ile A max 760 nm'de ölçülmüştür. (% Pirogalol olarak ifade taninler yüzdesi (üç değerin ortalaması) ağırlık / ' a ), toplam polifenol absorbans (A farktan hesaplandı 1 ) ve gizleme tozu yüzerilmemiş polifenol (A 2 Aşağıdakiler,) ifade: 62,5(A 1 − A 2 ) × m 2 /(A 3 − m 1 ) m burada 1 , numunenin kütlesi temsil incelenen gram olarak edilmesi; ve m 2 gram, pirogalol kütlesi. TF içeriği, Avrupa Farmakopesi 9.0'da [ 39 ] açıklanan yöntem kullanılarak hesaplandı . Kısaca, numunenin özü, geri akış kondansatörü altında aseton/HCl ile çıkarıldı; AICI 3 etil asetat ile özü çıkarıldı, flavonoid fraksiyonu kompleks λ de, HP 8453, UV-VIS spektrofotometresi ile ölçülmüştür maksimum 425 nm. Hiperosid yüzdesi olarak ifade edilen flavonoid içeriği (üç tayinin ortalaması), aşağıdaki ifade kullanılarak hesaplandı: A × 1,25/m burada A 425 nm'de absorbans ve (m) gram olarak incelenecek ekstraktların kütlesiydi.

      Toplam antosiyanin içeriği, Avrupa Farmakopesi 9.0'da açıklanan prosedüre göre araştırıldı [ 39 ]. Kısaca, incelenen ekstrakt, bir MeOH/HCl karışımı ile geri akış altında hidrolize edildi. Çözeltinin absorbansı, 528 nm'de bir HP 8453 UV-VIS spektrofotometre ile ölçülmüştür. Siyanidin-3-glukozit klorür olarak ifade edilen antosiyaninlerin yüzde içeriği (üç tayinin ortalaması), aşağıdaki ifade kullanılarak hesaplandı:
      A × 5000/(718 × m) burada A, 528 nm'de absorbans ve m, gram olarak incelenecek özütlerin kütlesiydi.

      Prosiyanidinlerin yüzde içeriği, Avrupa Farmakopesi 9.0'da [ 39 ] açıklanan yöntem kullanılarak hesaplandı . Kısaca, incelenen ekstrakt, bir EtOH/HCl karışımı ile geri akış altında hidrolize edildi. Prosiyanidinler, sulu katmandan BuOH ile ayrıldı; absorbans, X max 545 nm'de bir HP 8453 UV-VIS spektrofotometre ile ölçülmüştür. Siyanür klorür olarak ifade edilen prosiyanidinlerin yüzde içeriği (üç tayinin ortalaması), aşağıdaki ifade kullanılarak hesaplandı: A × 500/(75 × m) burada A, 545 nm'de absorbans ve m, gram olarak incelenecek özütlerin kütlesiydi.

      3.2.3. Metal İçeriğinin Belirlenmesi
      Araştırılan MLEI, MLEM, Mles, Mfel, MFEM ve MFES ekstraktları (0.5 g), PTFE küvetler içine aktarıldı ve% 65 7 ml HNO edildi 3 ve 1 mL% 30, H 2 O 2eklendi. Mikrodalga sindirimi bir mikrodalga fırında (Ethos 1, Advanced Microwave Digestion System, Milestone, Sorisole, İtalya) gerçekleştirilmiştir. Sindirim, aşağıdaki program altında gerçekleştirildi: 10 dakika boyunca 180 °C'ye ısınma ve bu sıcaklıkta 15 dakika tutuldu. Bir soğuma periyodundan sonra, numuneler niceliksel olarak ölçülü balona (50 mL) aktarıldı ve damıtılmış su ile seyreltildi. Her numune iki kopya halinde analiz edildi ve her analiz üç kopyadan oluşuyordu. Metal içeriğinin ölçümleri bir model 6500 Duo Endüktif Olarak Birleştirilmiş Atomik Emisyon Spektrometresinde (ICP-OES, Thermo Scientific, Waltham, MA, ABD) gerçekleştirilmiştir.

      3.2.4. HPLC Analizi
      Araştırılan fenolik bileşiklerin "parmak izi", Lichrospher 100RP 18e kolonu ile donatılmış bir Agilent Technologies 1200 HPLC sistemi ile, iki mobil fazın gradyan elüsyonları, yani "A/B" ("A"-0.2M fosforik asit çözeltisi) ile gerçekleştirildi. ve "B" -saf bir asetonitrildir) 1 mL/dk akış hızlarında, fotodiyot dizisi (PDA) algılaması (260, 325 nm'de UV), her zaman 70 dakika içinde. En iyi kombinasyonlar %89-75 A (0-35 dk); %75-60 A (35-55 dak); %60–35 A (55–60 dakika) ve %35–0 A (60–70 dakika). İncelenen numunelerin konsantrasyonları MLEI, MLEM, MLES, MFEI, MFEM ve MFES için sırasıyla 0.42, 0.50, 0.50, 0.44, 0.46, 0.44 mg/mL idi. Enjeksiyondan önce numuneler PTFE membran filtreden süzüldü. Araştırmada kullanılan standart için konsantrasyon şuydu: prosiyanidin B2 için 0.01 mg/mL, izokersetin için 0.15 mg/mL, 0.O -glukoside, vanilik ve neoklorojenik asit ve kaempferol için 0.30 mg/mL, gallik ve protokateşik asit için 0.34 mg/mL, kersetin için 0.36 mg/mL, sinapik asit ve resveratrol için 0.38 mg/mL, epikateşin ve 0.40 mg/mL için rutin, pirogallol için 0,46 mg/mL, kafeik asit için 0,52 mg/mL, klorojenik asit için 0,56 mg/mL, ferulik asit için 0,56 mg/mL, p -kumrik asit için 0,74 mg/ mL.Enjekte edilen standart çözeltilerin hacmi , ayrıca test edilen numune ekstraktları için 4 µL idi.

      Tanımlama, tutma sürelerine ve bindirme eğrilerine dayanıyordu. Spektrum eşleştirme başarılı olduktan sonra, sözde pik saflık testi aracılığıyla tam bir tanımlama elde etmek için ilgili standartlarla artış yapılarak sonuçlar onaylandı. Bu gereksinimleri karşılamayan bu zirveler ölçülmedi. Miktar belirleme, standartlarla harici kalibrasyon ile yapıldı.

      3.3. Antioksidan Aktivitesini Belirleme Yöntemleri
      3.3.1. Radikal Temizleme Etkinliği
      Seyreltilmiş ekstrakt (sırasıyla MLEI, MLEM, MLES, MFEI, MFEM ve MFES için 0,42, 0,50, 0,50, 0,44, 0,46, 0,44 mg/mL konsantrasyonlu 300 µL stok çözeltisi) ve 2,7 mL 0,1 mM etanol DPPH çözeltisi karıştırıldı. Absorbans, karanlıkta oda sıcaklığında 30 dakikalık inkübasyondan sonra, boş olarak etanole karşı 517 nm'de kaydedildi. Serbest radikal temizleme aktivitesi, aşağıdaki formül kullanılarak test çözeltisi yerine etanol içeren kontrol çözeltisine karşı hesaplandı:
      DPPH radikal süpürme kapasitesi (%) = 100 − [(A S − A B ) × 100/ AC ] Bir S , DPPH radikal solüsyonu ile muamele edilmiş ekstraktın etanol solüsyonunun absorpsiyonuydu; A B , DPPH radikal solüsyonu ile işleme tabi tutulmamış ekstraktın etanol solüsyonunun absorpsiyonuydu; Bir Cı- DPPH etanol çözeltisi absorpsiyondu. İnhibisyon yüzdesi numune konsantrasyonuna karşı çizildi ve IC 50 değerleri doğrusal bağlanım analizi ile belirlendi. Pozitif kontrol olarak sentetik antioksidan tert -butil hidroksitoluen (BHT) kullanıldı.

      3.3.2. Demiri Azaltan Antioksidan Güç (FRAP)
      Seyreltilmiş ekstrakt (sırasıyla MLEI, MLEM, MLES, MFEI, MFEM ve MFES için 0,42, 0,50, 0,50, 0,44, 0,46, 0,44 mg/mL konsantrasyonlu 100 µL stok solüsyonu) ve 3,0 mL taze hazırlanmış FRAP reaktifi ( pH 3.6 artı 40 mM HCl, 10 mM TPTZ çözeltisi 2.5 mL artı 20 mM FeC 2.5 mL tampon maddesi 300 mM asetat, 25 ml 3 x 6H 2 O) karıştırıldı. Absorbans, 37°C'de 30 dakikalık inkübasyondan sonra 100 uL'ye benzer solvent içeren bir köre karşı 593 nm'de kaydedildi. FRAP-değeri FeSO kalibrasyon eğrisinden hesaplanmıştır 4 x 7H 2 O Standart çözeltiler, kaplama konsantrasyon aralığı 100-1000 mmol / L ve mmol Fe olarak ifade 2 + / g ekstreler.

      3.3.3. Dönüşümlü voltametri
      Hücre (10 mL), üç elektrotlu bir sistem, bir polieter eter keton (PEEK) gövdesine gömülü bor katkılı elmas (BDD) elektrottan (iç çap 3 mm; Windsor Scientific Ltd., Slough, UK) oluşuyordu. 3 mm'lik bir iç çap, 0.075 Ω cm'lik bir özdirenç ve 1000 ppm'lik bir bor doping seviyesi (tedarikçi tarafından bildirildiği üzere), çalışma elektrotu olarak bir Ag/AgCl (3 M KCl) ve bir referans elektrot olarak bir Ag/AgCl (3 M KCl) ve bir Karşı elektrot olarak Pt tel. İlk ölçüme başlamadan önce, BDD elektrotu deiyonize su ile durulandı ve bir parça nemli ipek bezle ayna benzeri bir yüzey görünümü elde edilene kadar (yüzeyin mekanik olarak zarar görme olasılığı minimumla) hafifçe ovuldu. Daha sonra, 1 MH 2 SO 4'te 180 s boyunca +2 V ayarlanarak anodik olarak ön işleme tabi tutulmuştur.Elektrot yüzeyini temizlemek (herhangi bir yabancı maddeden kurtulmak) ve ardından çalışma elektrodunun hidrojen sonlu yüzeyini yenilemek için 180 saniye boyunca -2 V'de katodik ön işlem. Ölçümlere başlamadan önce ve çalışma gününün sonunda BDD elektrotunun stabilitesini ve avantajlarını doğrulamak için K 4 [Fe(CN) 6 ]/K 3 [Fe(CN) 6 ] çiftindeki potansiyel/akım değişiklikleri izlendi. . Gün içerisinde bu değişimlerin %5'in altında olduğu gözlemlenmiştir. Nötr pH'da fenoliklerin oksidasyonu fizyolojik koşulları taklit ettiğinden numuneler pH 7'de fosfat tamponunda incelenmiştir. Tarama, 100 mV s -1 tarama hızı ile 0 mV ile 1200 mV arasındaki potansiyel aralığında alındı .

      3.4. İstatistiksel analiz
      Tüm deneyler, her ekstrakt için üç kopya halinde yapıldı. İstatistiksel analizler Microsoft Excel 2007 (Microsoft Corporation, Redmond, WA, ABD) ve SPSS Statistics 22.0 (IBM Corporation, Armonk, NY, ABD) program paketleri kullanılarak yapıldı. Veriler, varyans analizi (ANOVA) ve post hoc test olarak Tukey'nin HSD testi kullanılarak analiz edildi. Korelasyon katsayısı regresyon ve korelasyon analizi ile hesaplandı.

      Git: 4. Sonuçlar
      Sonuçlarımız, araştırılan tüm yabanmersini yaprak ve meyve ekstraktlarının fenolik bileşikler açısından zengin olduğunu ve iki spektrofotometrik yöntemle ölçülen iyi antioksidan aktivite gösterdiğini ve sonuçların yapılan döngüsel voltametri testleriyle de uyumlu olduğunu ortaya koydu. Bu araştırma, farklı çözücüler kullanılarak ekstraksiyon yöntemleriyle elde edilen ekstraktlardaki fenolik bileşikler hakkında sistematik ve kapsamlı bilgiler sağlamıştır. Sonuçlar, antioksidan özellikler ve toplam fenolik içerik dikkate alındığında, etanolün su açısından üstün bir çözücü olarak kabul edilebileceğine işaret etti. Bir HPLC yöntemi kullanarak, yaprak ve meyve ekstraktlarında farklı miktarlarda on sekiz ayrı fenolik bileşiğin varlığını doğruladık. En bol klorojenik asit, ardından resveratrol ile protokateşik asit, araştırılan ekstraktlarda önemli miktarlarda izokersetin, quesetin ve hiperosid bulunur. Mevcut literatür verilerine göre, tanımlanan fenolik bileşikler, tip 2 diyabet riskini ve buna bağlı olarak artan mikrovasküler ve makrovasküler komplikasyon riskini azaltmada rol oynayabilir. Bununla birlikte, incelenen su özütleri, etanol özütlerine kıyasla temel metallerin çoğunluğunu daha yüksek miktarda içeriyordu. İncelenen numunelerde metallerin böyle bir mevcudiyeti, insülin seviyesinin düzenlenmesi için faydalı olarak kabul edilebilir; sonuçlar özellikle Mn için umut vericiydi. Bu bulgular, yaban mersininin antidiyabetik etkileri olan bir bitki olarak geleneksel olarak yerleşik kullanımını açıklamaya katkıda bulunur. Sunulan verilere dayanarak, uygulanan ekstraksiyon yöntemleri, elde edilen ekstraktların, antiglisemik potansiyelleri ile tanınan önemli miktarda değerli maddeler içerdiğini ortaya çıkardı. Daha fazla araştırma, hem fenolikler hem de mineral bileşenlerin optimize edilmiş miktarını sağlayabilen yöntemle elde edilen ekstraktların farmakolojik aktivitesine ilişkin veriler sağlamaya odaklanabilir. Sonuçlarımız, halk hekimliğinde geleneksel kullanımlarına ek olarak, bu bitkinin değerli bir doğal antioksidan kaynağı olabileceğini ve bu nedenle gıda endüstrisi için sentetik katkı maddelerine uygulanabilir alternatifleri temsil eden büyük bir potansiyel olarak kabul edilebileceğini göstermiştir. Daha fazla araştırma, hem fenolikler hem de mineral bileşenlerin optimize edilmiş miktarını sağlayabilen yöntemle elde edilen ekstraktların farmakolojik aktivitesine ilişkin veriler sağlamaya odaklanabilir. Sonuçlarımız, halk hekimliğinde geleneksel kullanımlarına ek olarak, bu bitkinin değerli bir doğal antioksidan kaynağı olabileceğini ve bu nedenle gıda endüstrisi için sentetik katkı maddelerine uygulanabilir alternatifleri temsil eden büyük bir potansiyel olarak kabul edilebileceğini göstermiştir. Daha fazla araştırma, hem fenolikler hem de mineral bileşenlerin optimize edilmiş miktarını sağlayabilen yöntemle elde edilen ekstraktların farmakolojik aktivitesine ilişkin veriler sağlamaya odaklanabilir. Sonuçlarımız, halk hekimliğinde geleneksel kullanımlarına ek olarak, bu bitkinin değerli bir doğal antioksidan kaynağı olabileceğini ve bu nedenle gıda endüstrisi için sentetik katkı maddelerine uygulanabilir alternatifleri temsil eden büyük bir potansiyel olarak kabul edilebileceğini göstermiştir.

      Git: Kısaltmalar
      2,4,6-tripiridil-s-triazin (TPTZ), hidroklorik asit (HCl), demir (III) klorür (FeCl 3 ), 2,6-di- tert -butil-4-metilfenol (BHT), n - bütanol (BuOH), 1,1'-difenil-2-pikrilhidrzil (DPPH), toplam çözelti hacmi başına çözünen hacim ( v / v ), yüksek performanslı sıvı kromatografisi (HPLC), yüzde (%), litre başına gram ( g / L), İndaktif Atomik Emisyon Spektrometresi (ICP-OES), Myrtilli folium Soxhlet (Mles) ile elde edilen ekstrakt Myrtilli fructus Soxhlet (MFES) ile elde edilen ekstrakt, Myrtilli folium maserasyon (MLEM) ile elde edilen ekstre, Myrtilli fructus ekstrakt elde maserasyon ile (MFEM),İnfüzyonla elde edilen Myrtilli folium özütü (MLEI), Myrtilli fructus özütü infüzyonla elde edilir (MFEI), European Pharmacopoeia 9.0 (Ph. Eur. 9), mililitre (mL), gram (g), saat (h), dakika (dk) , metanol (MeOH), mililitre başına miligram (mg/mL), Santigrat ölçeği (°C), nanometre (nm), litre başına miligram (mg/L), bitki özlerinin gramı başına gallik asit eşdeğerleri kuru ağırlık (mg GAE/ g DW) belirleme katsayısı veya çoklu regresyon (R için çok sayıda belirleme katsayısı 2 ), dalga boyu (λ), maksimum (max), çözeltinin toplam ağırlığına göre ağırlık çözünen ( ağırlık / ' a ), absorbans (A), kütle (m), alüminyum klorür (AlCl 3), toplam fenolikler (TP), toplam tanenler (TT), toplam flavonoid (TF) içeriği, etanol (EtOH), politetrafloroetilen (PTFE), nitrik asit (HNO 3 ), hidrojen peroksit (H 2 O 2 ), dakikada mililitre (ml / dakika), fotodiyot dizi (PDA), mikrolitre (uL), tert- köklerinin% 50 uzaklaştırılmış olan bir t-butil hidroksitoluen (BHT), konsantrasyon (IC 50 ), demir indirgeme antioksidan gücü (sıkı bağlamak), demir ( II) sülfat (FeSO 4 ), litre başına milimol (mmol/L), bor katkılı elmas (BDD), polieter eter keton (PEEK), milimetre (mm), ohm (Ω), milyonda parça (ppm), istatistiksel önem (p), gümüş (Ag), gümüş klorür (AgCl), potasyum klorür (KCl), platin (Pt), volt (V), saniye (s), sülfürik asit (H2 SO 4 ), molarite (M), potasyum hekzasiyanoferrat (II) trihidrat (K 4 [Fe (CN) 6 ]), potasyum hekzasiyanoferrat (III) trihidrat (K 3 [Fe (CN) 6 ]), saniye başına mili volt ( mv/s), döngüsel voltametri (CV), miligram/gram (mg/g), glukoz taşıyıcı (GLUT), Dünya Sağlık Örgütü (WHO), günlük mineral alımları (DMI), sodyum (Na), 5'-adenozin monofosfat -aktif protein (AMPK), gram başına mikrogram (µg/g), reaktif oksijen türleri (ROS), reaktif nitrojen türleri (RNS), süperoksit (O 2− ), hidroksil (OH), nitrik oksit (NO), nitrojen dioksit (NO 2 − ), peroksinitrit (OONO −), reaktif türler (RS), süperoksit dismutaz (SOD), glutatyon peroksidaz (GPx), katalaz (CAT), mililitrede mikrogram (µg/mL), gramda milimol (mmol/g), temel bileşen analizi (PCA), akım (I), amper (A), potansiyel (E), alüminyum (Al), baryum (Ba), kalsiyum (Ca), potasyum (K), magnezyum (Mg), stronsiyum (Sr), demir (Fe), nikel (Ni), krom (Cr), bakır (Cu), kobalt (Co), arsenik (As), kurşun (Pb), manganez (Mn), kadmiyum (Cd), çinko (Zn).

      Git: Ek Malzemeler
      Ek Materyaller çevrimiçi olarak mevcuttur.
      Ek veri dosyası için buraya tıklayın. (687K, pdf)
      Git: Yazar Katkıları
      Kavramsallaştırma, VMT; Resmi analiz, SB-V., JM, DMS, IA, VV-P. ve VMT; Finansman edinimi, VMT; Soruşturma, SB-V. ve not; Metodoloji, SB-V., JM, DMS ve IA; Denetim, VMT; Yazma—orijinal taslak, SB-V., IA, NB, VV-P. ve VMT

      Git: Finansman
      Eğitim, Bilim ve Teknolojik Geliştirme Bakanlığı (Sırbistan) ve Bilim Bakanlığı (Karadağ), bu çalışmayı “ Vaccinium myrtillus'un fonksiyonel gıda ve dermokozmosötikte ( Vaccinium myrtyllus L) değerli fito-bileşenlerin potansiyel kaynağı olarak kimyasal, biyokimyasal ve mikrobiyolojik karakterizasyonu ile desteklemiştir. ., Ericaceae-eski çare, yeni uygulama)”, (Proje No. 451-03-01414/2016-09/1) ve Eğitim, Bilim ve Teknolojik Geliştirme Bakanlığı, III 45017 numaralı projeler ve OI 172030.

      Git: Çıkar çatışmaları
      Yazarlar tarafından herhangi bir potansiyel çıkar çatışması rapor edilmemiştir.

      Git: Dipnotlar
      Örnek Kullanılabilirliği: Mevcut Değil.

      Git: Referanslar

      1. Javanmardi J., Stushnoff C., Locke E., Vivanco JM İran Ocimum katılımlarının Antioksidan aktivitesi ve toplam fenolik içeriği . Gıda Kimyası 2003; 83 :547–550. doi: 10.1016/S0308-8146(03)00151-1. [ CrossRef ] [ Google Akademik ]
      2. Stajčić SM, Tepić AN, Djilas SM, Šumić ZM, Čanadanović-Brunet JM, Ćetković GS, Vulić JJ, Tumbas VT Berry meyvelerinin kimyasal bileşimi ve antioksidan aktivitesi. Acta Dönemi. Teknoloji. 2012; 43 :93–105. doi: 10.2298/APT1243093S. [ CrossRef ] [ Google Akademik ]
      3. Lin D., Xiao M., Zhao J., Li Z., Xing B., Li X., Kong M., Li L., Zhang Q., Liu Y., et al. Bitki fenolik bileşiklere ve bunların insan beslenmesindeki ve tip 2 diyabetin yönetimindeki önemine genel bir bakış. Moleküller. 2016; 21 :1374. doi: 10.3390/moleküller21101374. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      4. Sidorova Y., Shipelin V., Mazo V., Zorin S., Petrov N., Kochetkova A. Diyabetik sıçanlarda Vaccinium myrtillus L. yaprağı ve Phaseolus vulgaris L. tohum kabuğu özlerinin hipoglisemik ve hipolipidemik etkisi . Beslenme. 2017; 41 :107–112. doi: 10.1016/j.nut.2017.04.010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      5. Chu WK, Cheung SCM, Lau RAW, Benzie IFF Bilberry ( Vaccinium myrtillus L.) İçinde: Benzie IFF, Wachtel-Galor S., editörler. Bitkisel Tıp Biyomoleküler ve Klinik Yönleri. 2. baskı. CRC Basın; Boca Raton, FL, ABD: Londra, İngiltere: New York, NY, ABD: 2011. s. 55–73. [ Google Akademik ]
      6. Može S., Polak T., Gašperlin L., Koron D., Vanzo A., Poklar Ulrih N., Abram V. Sloven yaban mersini ( Vaccinium myrtillus L.) ve yaban mersini ( Vaccinium corymbosum L.) J. Tarım. Gıda Kimyası 2011; 59 :6998–7004. doi: 10.1021/jf200765n. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      7. Demczuk M., Garbiec K. Yenilebilir meyvelerde ağır metaller. yaban mersini Vaccinium myrtillus L. vaka çalışması [(erişim tarihi 25 Mayıs 2018)]; Çevre. koruma Nat. Kaynak. 2009 40 :307–312. Çevrimiçi olarak erişilebilir: https://pbn.nauka.gov.pl/polindex-we...2-1c7a32bf4782 . [ Google Akademik ]
      8. Kozanecka T., Chojnicki J., Kwasowski W. Kirlilik içermeyen bölgelerden bitkideki ağır metallerin içeriği. [(25 Mayıs 2018'de erişildi)]; Pol. J. Çevre. Damızlık. 2002 11 :395–399. Çevrimiçi olarak erişilebilir: http://citeseerx.ist.psu.edu/viewdoc...=rep1&type=pdf . [ Google Akademik ]
      9. Reimann C, Koller F., Frengstad B., Kashulina G., Niskavaara H., Englmaier S. birçok bitki türlerinde eleman bileşimin karşılaştırması ve 1,500,000 bölgesinin kendi alt-tabaka 2 Kuzey Avrupa'da alanı. bilim Toplam Çevre. 2001; 278 :87–112. doi: 10.1016/S0048-9697(00)00890-1. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      10. Dai J., Mumper RJ Bitki fenolikleri: Ekstraksiyon, analiz ve bunların antioksidan ve antikanser özellikleri. Moleküller. 2010; 15 :7313–7352. doi: 10.3390/moleküller15107313. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      11. Lugonja NM, Stankoviç DM, Miličić B., Spasic SD, Marinkoviç V., Vrvić MM Anne sütü kalitesinin elektrokimyasal izlenmesi. Gıda Kimyası 2018; 240 :567–572. doi: 10.1016/j.foodchem.2017.07.164. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      12. Sathishkumar T., Baskar R., Shanmugam S., Rajasekaran P., Sadasivam S., Manikandan V. Tabernaemontana heyneana Duvarının yapraklarından flavonoid ekstraksiyonunun optimizasyonu . L16 Ortogonal tasarımı kullanarak. [(25/05/2018 tarihinde erişildi)]; J. Nat. bilim 2008 6 :10–21. Çevrimiçi olarak erişilebilir : http://www.sciencepub.net/nature/060...442_tsk_ns.pdf . [ Google Akademik ]
      13. Pop M., Lupea AX, Turcus V. Vaccinium meyvelerinden fenolik bileşiklerin ekstraksiyonu üzerine çalışmalar . [(25 Mayıs 2018'de erişildi)]; Rev. Chim. 2008 59 :491-494. Çevrimiçi olarak erişilebilir : http://www.revistadechimie.ro/pdf/POP%20M..pdf . [ Google Akademik ]
      14. Bisset NG, Wichtl M. Bitkisel İlaçlar ve Fitofarmasötikler. 2. baskı. Eczane; Stuttgart, Almanya: 2001. [ Google Akademik ]
      15. Vinayagam R., Jayachandran M., Xu B. Basit fenolik asitlerin antidiyabetik etkileri: Kapsamlı bir inceleme. Fitoster. Araş. 2016; 30 :184-199. doi: 10.1002/ptr.5528. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      16. Vinayagam R., Xu B. Diyet flavonoidlerinin antidiyabetik özellikleri: Bir hücresel mekanizma incelemesi. Nutr. Metab. 2015; 12 : 60. doi: 10.1186/s12986-015-0057-7. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      17. Vučić DM, Petković MR, Rodić-Grabovac BB, Stefanović OD, Vasić SM, Čomić LR Yabanmersininin ( Vaccinium myrtillus L.) in vitro antibakteriyel ve antioksidan aktiviteleri . Afr. J. Mikrobiyol. Araş. 2013; 7 :5130–5136. doi: 10.5897/ajmr2013.2524. [ CrossRef ] [ Google Akademik ]
      18. Roslon W., Osinska E., Pioro-Jabrucka E., Grabowska A. Yabani yaban mersini popülasyonlarının morfolojik ve kimyasal değişkenliği ( Vaccinium myrtillus L.) Pol. J. Çevre. Damızlık. 2011; 20 :237-243. [ Google Akademik ]
      19. Bljajic K., Petlevski R., Vujic L., Čačić A., Šoštarić N., Jablan J., Carvalho IS, Končić MZ Vaccinium'un sulu ve hidroetanol özütlerinin kimyasal bileşimi, antioksidan ve a-glukosidaz inhibe edici aktiviteleri mersin yaprakları. Moleküller. 2017; 22 :703. doi: 10.3390/moleküller22050703. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      20. Upton R. Yabanmersini Meyvesi Vaccinium myrtillus L.: Analiz, Kalite Kontrol ve Terapötik Standartları. Amerikan Bitkisel Farmakopesi; Scotts Valley, CA, ABD: 2001. Amerikan bitkisel farmakopesi ve terapötik özet. [ Google Akademik ]
      21. Bahadoran Z., Mirmiran P., Azizi F. Diyabet yönetiminde potansiyel nutrasötikler olarak diyet polifenolleri: Bir inceleme. J. Diyabet Metab. Bozukluk. 2013; 12 : 43. doi: 10.1186/2251-6581-12-43. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      22. Hokkanen J., Mattila S., Jaakola L., Pirttilä AM, Tolonen A. İsveç kirazı ( Vaccinium vitis-idaea L.), yaban mersini ( Vaccinium myrtillus L.) ve melez yaban mersini ( Vaccinium x intermedium Ruthe ) fenolik bileşiklerin tanımlanması L.) bırakır. J. Agric. Gıda Kimyası 2009; 57 :9437–9447. doi: 10.1021/jf9022542. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      23. Piparo EL, Scheib H., Frei N., Williamson G., Grigorov M., Chou CJ Nişasta sindirimini kontrol etmek için flavonoidler: İnsan a-amilazı inhibe etmek için yapısal gereksinimler. J. Med. Kimya 2008; 51 :3555–3561. doi: 10.1021/jm800115x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      24. Arika WM, Ogola PE, Nyamai DW, Mawia AM, Wambua FK, Kiboi NG, Wambani JR, Njagi SM, Rachuonyo HO, Emmah KO, et al. Seçilmiş Kenya antidiyabetik şifalı bitkilerinin mineral element içeriği. reklam Teknoloji Biol. Med. 2016; 4 :160. doi: 10.4172/2379-1764.1000160. [ CrossRef ] [ Google Akademik ]
      25. Khan AR, Awan FR Tip 2 diyabetin patogenezinde metaller. J. Diyabet Metab. Bozukluk. 2014; 13 : 16. doi: 10.1186/2251-6581-13-16. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      26. Patel P., Patel NM, Patel PM Bitkisel ilaçların kalite kontrolüne ilişkin yönergeler. [(25 Mayıs 2018'de erişildi)]; Int. J. Res. Ayurveda Ecz. 2011 2 : :1148–1154. Çevrimiçi olarak erişilebilir : http://www.ijrap.net/admin/php/uploads/563_pdf.pdf . [ Google Akademik ]
      27. Avrupa Ekonomik Topluluğu (EEC) Komisyonu Direktifi 2008/100/EC. Tavsiye edilen günlük alımlar, enerji dönüşüm faktörleri ve tanımlarla ilgili olarak gıda maddelerinin beslenme etiketlemesine ilişkin Konsey Direktifi 90/496/EEC'de Değişiklik Yapılması. [(25 Mayıs 2018'de erişildi)]; Kapalı. J.Eur. Komün. 2008 L285 :9–12. Çevrimiçi olarak erişilebilir: https://eur-lex.europa.eu/legal-cont...LEX:32008L0100 . [ Google Akademik ]
      28. Erejuwa OO Diabetes mellitusta oksidatif stres: Hipoglisemik ilaçların ve/veya antioksidanların rolü var mı? İçinde: Lushchak V., editör. Oksidatif Stres ve Hastalıklar. InTech Açık; Londra, Birleşik Krallık: 2012. s. 217–246. [ Google Akademik ]
      29. Moussa SA Diabetes mellitusta oksidatif stres. [(25 Mayıs 2018'de erişildi)]; ROM. J. Biyofiz. 2008 18 :225–236. Çevrimiçi olarak erişilebilir: http://rjb.ro/articles/214/samou.pdf . [ Google Akademik ]
      30. Puangjan A., Chaiyasith S. Gallik asit, kafeik asit ve protokateşik asit doğal antioksidanlarının eşzamanlı tayini için verimli bir ZrO 2 /Co 3 O 4 /indirgenmiş grafen oksit nanokompozit elektrokimyasal sensör. Elektrokimya. Acta. 2016; 211 :273–288. doi: 10.1016/j.electacta.2016.04.185. [ CrossRef ] [ Google Akademik ]
      31. Zugic A., Djorđevic S., Arsic I., Markovic G., Zivkovic J., Jovanovic S., Tadic V. Vrujci Spa, Sırbistan'dan seçilmiş 10 bitkide antioksidan aktivite ve fenolik bileşikler. Sanayi Mahsulleri Prod. 2014; 52 :519–527. doi: 10.1016/j.indcrop.2013.11.027. [ CrossRef ] [ Google Akademik ]
      32. Balasundram N., Sundram K., Samman S. Bitkilerdeki fenolik bileşikler ve tarımsal sanayi yan ürünleri: Antioksidan aktivite, oluşum ve potansiyel kullanımlar. Gıda Kimyası 2006; 99 :191–203. doi: 10.1016/j.foodchem.2005.07.042. [ CrossRef ] [ Google Akademik ]
      33. Wojdyło A., Oszmianski J., Czemerys R. Seçilen 32 bitkide antioksidan aktivite ve fenolik bileşikler. Gıda Kimyası 2017; 105 :940-949. doi: 10.1016/j.foodchem.2007.04.038. [ CrossRef ] [ Google Akademik ]
      34. Chew KK, Ng SY, Thoo YY, Khoo MZ, Wan Aida WM, Ho CW Etanol konsantrasyonunun, ekstraksiyon süresinin ve ekstraksiyon sıcaklığının, Centella asiatica ekstraktlarının fenolik bileşiklerin geri kazanımı ve antioksidan kapasitesi üzerindeki etkisi . [(25 Mayıs 2018'de erişildi)]; Int. Gıda Araş. J. 2011 18 :571–578. Çevrimiçi olarak erişilebilir : http://www.ifrj.upm.edu.my/1820(02)%202011/(15)%20IFRJ-2010-085.pdf . [ Google Akademik ]
      35. Lianda RLP, Sant´ Ana LDO, Echevarria A., Castro RN Brezilya balları ve özlerinin antioksidan aktivitesi ve fenolik bileşimi. J. Braz. Kimya Soc. 2012; 23 :618–627. doi: 10.1590/S0103-50532012000400006. [ CrossRef ] [ Google Akademik ]
      36. Rodrigues E., Poerner N., Rockenbach II, Gonzaga LV, Mendes CR, Fett R. Brezilya'da yetişen yaban mersini çeşitlerinin fenolik bileşikleri ve antioksidan aktivitesi. Cienc. Teknoloji. Besin. 2011; 31 :911-917. doi: 10.1590/S0101-20612011000400013. [ CrossRef ] [ Google Akademik ]
      37. Gerszon J., Rodacka A., Puchala M. Resveratrolün antioksidan özellikleri ve nörodejeneratif hastalıklarda koruyucu etkileri. reklam Hücre Biol. 2015; 4 :97-117. doi: 10.2478/acb-2014-0006. [ CrossRef ] [ Google Akademik ]
      38. Koleckar V., Kubikova K., Rehakova Z., Kuca K., Jun D., Jahodar L., Opletal L. Sağlığı etkileyen antioksidanlar olarak yoğunlaştırılmış ve hidrolize edilebilir tanenler. Mini Rev. Med. Kimya 2008; 8 :436–447. doi: 10.2174/138955708784223486. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      39. Avrupa Konseyi . Avrupa Farmakopesi. 9. baskı. Avrupa Konseyi; Strasbourg, Fransa: 2016. [ Google Akademik ]
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        GLOKOM (Göz Tansiyonu Karasu Hastalığı) Ginkgo Seti ile Tedavisi, Göz Basıncını Tetikleyen Faktörler


        GLOKOM, Retina Delinmesi, Hipofiz Bezesindeki Makro veya Mikro Adenom Görmeyi Engeller


        KONJONKTİVİT, Retina Dekolmanı, Göz Kuruluğu ve Sarı Nokta Hastalığı; Yaban Mersini ile Tedavisi


        RETİNA Dekolmanı, Retina Delinmesi, Glokom ve Sarı Nokta Hastalığının Yaban Mersini ile Tedavisi


        Göz Kuruluğu, KONJUNKTİVİT, Glokom, Arpacık, Retina ve Sarı Nokta hasta. Yaban Mersini ile tedavisi


        Göz Astigmatı Nasıl Tedavi Edilir Baş Ağrısı Nasıl Geçer Nefes Nasıl Açılır


        Glokom Nedir Glokoma Ne İyi Gelir Retina Deliğine Ne İyi Gelir Makula Deliğine Ne İyi Gelir


        Sarı Noktaya Ne İyi Gelir Göz Kuruluğuna Ne İyi Gelir Boğaz İltihabına Ne İyi Gelir..


        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5
          RETİNA Dekolmanı, Üveit, Retina Çökmesi ve Glokom (Göz Tansiyonu) Yaban Mersini ile Tedavisi


          RETİNA Dekolmanı, delinmesi, çökmesi, incelmesi ve yırtılmasının Yaban Mersini serti ile tedavisi


          Yabanmersini (Vaccinium myrtillus L.)
          Wing-kwan Chu , Sabrina CM Cheung , Roxanna AW Lau ve Iris FF Benzie .

          Git: 4.1. GİRİŞ
          Yaban mersini ( Vaccinium myrtillusL.), antosiyaninlerin en zengin doğal kaynaklarından biridir. Bu polifenolik bileşenler yaban mersini mavi/siyah rengini ve yüksek antioksidan içeriğini verir ve yaban mersini ve diğer meyve meyvelerinin rapor edilen sağlık yararlarından sorumlu anahtar biyoaktif maddeler olduğuna inanılır. Yaban mersini en yaygın olarak görüşü iyileştirmek için teşvik edilse de, kan şekerini düşürdüğü, anti-inflamatuar ve lipid düşürücü etkilere sahip olduğu ve antioksidan savunmayı desteklediği ve oksidatif stresi azalttığı bildirilmiştir. Bu nedenle yaban mersini, iltihaplanma, dislipidemi, hiperglisemi veya artan oksidatif stres, kardiyovasküler hastalık (CVD), kanser, diyabet ve demans ve diğer yaşa bağlı hastalıklar ile ilişkili durumların tedavisinde veya önlenmesinde potansiyel bir değere sahiptir. Yaban mersininin antimikrobiyal aktiviteye sahip olduğuna dair raporlar da vardır.

          Git: 4.2. BİLBERY: AÇIKLAMA, KULLANIM, KAYNAK VE BİLEŞİM
          Yabanmersini bitkisi ( Şekil 4.1 ), kuzey Avrupa'ya özgü düşük büyüyen bir çalıdır, ancak şimdi Kuzey Amerika ve Asya'nın bazı bölgelerinde de bulunur. Yabanmersini, Avrupa yaban mersini, yabanmersini, huckleberry ve böğürtlen olarak da bilinir. Yaban mersini ( Vaccinium corymbosum ) ve kızılcık ( Vaccinium macrocarpon ; Upton 2001 ) içeren büyük bir bitki cinsine ( Vaccinium ) aittir . Yaban mersini bazen yaban mersini olarak adlandırılır çünkü her ikisi de benzer görünüme sahiptir ve yakın akrabadır, ancak gerçek yaban mersini Amerika Birleşik Devletleri'ne özgüdür ( Ulusal Sağlık Enstitüleri 2010). Yabanmersini genellikle fundalıklarda, çayırlarda ve nemli iğne yapraklı ormanlarda yetişir ve büyümesi orta derecede gölge ve orta derecede nemli zemin koşulları tarafından desteklenir. Yaban mersini küçük (5-9 mm çapında) bir meyvedir, mavimsi siyah renkli, birçok tohumludur.
          ŞEKİL 4.1.  (Renkli eke bakın. ŞEKİL 4.1


          (Renk ekine bakın.) Yabanmersini ( Vaccinium myrtillus L.). (ukwildflowers.com'dan. İzinle.)

          Yabanmersini, Amerikan Bitkisel Ürünler Derneği ( Upton 2001 ) tarafından 1. Sınıf bitki olarak sınıflandırılmıştır , yani uygun şekilde kullanıldığında güvenle tüketilebilir. Herhangi bir mutajenik aktivite rapor edilmemiştir ve kullanımı için belirtilen herhangi bir kontrendikasyon yoktur ( Upton, 2001 ). Yabanmersini, taze, dondurulmuş ve kurutulmuş bütün meyvelerin yanı sıra reçeller, reçeller ve meyve suları şeklinde satılmaktadır ve giderek artan bir şekilde sıvı veya toz konsantreler gıda takviyesi olarak satılmaktadır. Yabanmersini, flavonoller (kersetin, kateşinler), tanenler, ellagitanninler ve fenolik asitler dahil olmak üzere çeşitli fenolik bileşikler içerir, ancak antosiyaninler, fitokimyasal karışımına açık ara en büyük katkıyı sağlar ( Upton 2001 ; Seeram 2008).). Bu doğal olarak oluşan fenolik bileşikler, redoks-aktif antioksidanların yanı sıra demir şelatörleridir ( Benzie 2003 ; Zafra-Stone ve ark. 2007 ) ve kırmızı, mavi ve mor renkli çiçeklerde, meyvelerde ve sebzelerde bulunur. Antosiyaninlerin olağan günlük diyet alımı yaklaşık 200 mg'dır ( Zafra-Stone ve ark. 2007 ). Yaban mersini, çilek, kızılcık, mürver, vişne ve ahududu gibi diğer meyve türlerine kıyasla daha yüksek antosiyanin içeriğine sahiptir ( Kowalczyk ve ark. 2003 ; Bagchi ve ark. 2004 ; Yıldırım 2006 ; Cravotto ve ark. 2010 )). Yaban mersininin toplam antosiyanin içeriği genellikle 300-700 mg/100 g taze meyve aralığındadır, ancak bu aralık çeşit, yetiştirme koşulları ve meyvenin olgunluk derecesine göre değişiklik gösterir ( Upton 2001 ; Burdulis ve ark. 2009 ). 100 g taze yaban mersini, antosiyaninlerle birlikte küçük miktarlarda C vitamini (3 mg), kersetin (3 mg) ve kateşin (20 mg; Upton 2001 ; Erlund ve ark. 2003 ) içerir.

          Dikkatlerin çoğu yaban mersininin sağlık yararları ile ilgili olarak antosiyaninlerin antioksidan özelliklerine odaklanmış olsa da, etkileri muhtemelen basit antioksidan etkinin ötesine geçerek hücre sinyal yollarını, gen ekspresyonunu, DNA onarımını ve hücre yapışmasını ve ayrıca hücre yapışmasını içerecektir. antineoplastik ve antimikrobiyal etkiler ( Kowalczyk ve diğerleri 2003 ; Packer ve Cadenas 2007 ; Zafra-Stone ve diğerleri 2007 ; Seeram 2008 ; Benzie ve Wachel-Galor 2010 ). Ticari yaban mersini ürünleri genellikle %25 antosiyanidin içeriğine (%36 antosiyaninlere eşdeğer) standartlaştırılır; ancak bu içerik büyük ölçüde değişebilir ( Upton 2001 ; Lee 2008). Önerilen günlük dozajlar da büyük ölçüde değişiklik gösterir, örneğin 20-60 g kuru meyveler ve 160-480 mg toz özüt ( Upton 2001 ).

          Git: 4.3. antosiyaninler
          Antosiyaninler (Yunanca çiçek için anthos ve mavi için kyanozdan ) suda çözünür polifenol flavonoid bileşikleridir ( Clifford 2000 ; Ghosh ve Konishi 2007 ; Yoshida, Mori ve Kondo 2009 ). Antosiyaninler, bitkilerin pembe, kırmızı, mavi ve mor renklerinden sorumludur ( Upton 2001 ). Renk pH'a bağlıdır; pH < 2'de renk kırmızıdır, pH arttıkça maviye dönüşür ve sonunda yüksek pH'da renksiz hale gelir. Antosiyanin molekülü, bir şeker parçasının bağlı olduğu bir antosiyanidin "çekirdeği"nden oluşur. Şeker çeşitli pozisyonlarda eklenebilir ve glikoz, galaktoz, ksiloz, arabinoz veya ramnoz olabilir ( Clifford 2000 ; Kong ve diğerleri. 2003).; Önceki ve Wu 2006 ). Antosiyaninler, çekirdek antosiyanidin yapısına bağlı hidroksil ve metoksil gruplarının sayısı ve konumu bakımından da farklılık gösterir. Bu nedenle, doğal olarak oluşan 20'den az antosiyanidin olmasına rağmen, yüzlerce farklı antosiyanin vardır ( Upton 2001 ; Prior ve Wu 2006 ; Ghosh ve Konishi 2007 ; Yoshida, Mori ve Kondo 2009 ). Doğada en yaygın bulunan antosiyanidinler siyanidin, delphinidin, petunidin, peonidin, pelargonidin ve malvidindir, ancak bunlar çok nadiren aglikon (şekersiz) formlarında bulunurlar ( Kong ve diğerleri 2003 ; Prior ve Wu 2006).). Yaban mersini içinde bulunan ana antosiyaninlerin konsantrasyonları Tablo 4.1'de verilmiştir .
          TABLO 4.1.  Yaban Mersinindeki Ana Antosiyaninler ve Bağıl Konsantrasyonları. TABLO 4.1


          Yaban Mersinindeki Ana Antosiyaninler ve Bağıl Konsantrasyonları.

          Bitkilerdeki antosiyanin pigmentlerinin işlevinin esas olarak hayvanları, böcekleri ve kuşları tozlaşma veya tohum dağıtma için çekmek olduğu düşünülse de, antosiyaninler bitki dokularının antimikrobiyal ve antioksidan savunmasının yanı sıra soğuğa toleransta da yardımcı olabilir ( Benzie 2003 ; Kong et al. diğerleri 2003 ). Çileklerin antosiyanin içeriği türlere göre değişir ve ayrıca güneş radyasyonu miktarı, sıcaklık ve topraktaki azot ve fosfor içeriği gibi çevresel faktörlere de bağlıdır. Yetiştirme tekniği de meyvelerin toplam fenolik seviyesini etkileyen bir faktördür. Antosiyaninler esas olarak meyvenin kabuğunda bulunur ve hasat sırasında meyve kabuğunun neden olduğu hasar, antosiyanin içeriğini azaltır ( Upton 2001).). Meyvelerin olgunluk dereceleri de toplam fenolik içerikteki varyasyona katkıda bulunur - fenolik bileşiklerin konsantrasyonu genellikle olgunlaşmamış meyvelerde olgun meyvelere göre daha yüksek olmasına rağmen, antosiyaninler yabanmersini olgunlaşması sırasında birikir ( Upton 2001 ). Antosiyaninler güçlü antioksidan özelliklere sahiptir ve antosiyanin pigmentinin içeriği, bitkilerin antioksidan aktivitesi ile doğrudan ilişkilidir ( Upton 2001 ; Bagchi ve ark. 2004 ; Yıldırım 2006 ; Zafra-Stone ve ark. 2007).). Antioksidan etkilerine ek olarak, antosiyaninlerin DNA'yı stabilize ettiği, adiposit gen ekspresyonunu değiştirdiği, insülin sekresyonunu ve duyarlılığını iyileştirdiği ve antiapoptotik, anti-inflamatuar ve antibakteriyel etkileri olduğu bildirilmiştir ( Mas ve diğerleri 2000 ; Kong ve diğerleri 2003 ; Kowalczyk ve diğerleri 2003 ; Tsuda ve diğerleri 2005 ; Seeram 2008 ). Antosiyaninlerin bu sayısız ve potansiyel olarak oldukça faydalı etkileri, yaban mersini gibi gıdaları bu bileşikler açısından zengin, “fonksiyonel gıdalar” ve fitoterapötikler olarak potansiyel adaylar yapar ( Cravotto ve ark. 2010 ).

          Git: 4.4. ANTOSİYANİNLERİN BİYOYAVLANABİLİRLİĞİ VE DAĞILIMI
          Diğer polifenolik flavonoidlerin aksine, antosiyaninler bozulmadan, yani şeker kısımlarını çıkarmadan emilebilir. Antosiyaninlerin absorpsiyonunun (ve renal eliminasyonunun) hızlı olduğu, ancak etkinliğin düşük olduğu bildirilmektedir ( Prince ve Wu 2006 ). Sıçanlarda emilim mide ve ince bağırsakta gerçekleşir ve antosiyaninin yapısına göre değişir. Emilim, malvidin-3-glukozit için %11'den siyanidin-3-glukozit için %22'ye kadar değişmekteydi ( Talavera ve diğerleri, 2003 ). Plazma antosiyaninleri, çilek veya meyve özütlerinin oral yoldan verilmesinden birkaç dakika sonra plazmada bulunur, ancak 6 saat içinde temizlenir. İnsanlarda üzüm, kırmızı şarap, mürver, frenk üzümü, chokeberry, ebegümeci ve ahudududan antosiyanin emilimi incelenmiştir ( Önceki ve Wu 2006 tarafından gözden geçirilmiştir).). Çoğu çalışma, alımdan 1-2 saat sonra (0.5-3.0 saat aralığında) maksimum bir antosiyanin plazma konsantrasyonu göstermiştir. Maksimal plazma konsantrasyonları açıkça dozla ilişkili değildi ve genellikle 5-50 nmol/L aralığındaydı. Bildirilen en yüksek plazma konsantrasyonu (99 nmol/L), 266 µmol malvidin-3-glukozit içeren bir kırmızı üzüm suyu dozundan sonra meydana geldi ( Netzel ve ark. 2003 ). İdrarda geri kazanılan antosiyaninlerin başlıca metabolitleri, glukuronize ve metillenmiş konjugatlardır ( Önceki ve Wu 2006 ).

          Yaban mersini antosiyaninleri ile ilgili olarak, bazı hayvan çalışmaları yapılmış olmasına rağmen ( Upton 2001 tarafından tarif edildiği gibi ) insan verileri eksiktir . Sıçanlarda, yaban mersini antosiyaninlerinin intraperitoneal uygulamasından 1 saat sonra plazma toplam antosiyanin konsantrasyonu 26 mg/L olmuştur. Antosiyaninler, aynı zamanda 12-79 µg/g doku konsantrasyonlarında toplanan dokularda da saptanabilirdi. Böbrek, plazmadan üç kat daha yüksek antosiyanin içeriğine sahipti ve cilt, plazmadan 1.5 kat daha yüksek içeriğe sahipti ( Talavera ve ark. 2003 , 2005 ). Yaban mersini antosiyaninlerinin sıçanlara oral yoldan (400 mg/kg) uygulanmasından sonra, 15 dakikada maksimum 2.47 mg/L plazma konsantrasyonu rapor edilmiş ve biyoyararlanım %1.2 olarak tahmin edilmiştir ( Upton 2001 tarafından rapor edilmiştir).). Yaban mersini antosiyaninlerinin dağılımı ve atılımına ilişkin daha yakın tarihli bir hayvan çalışmasında ( Sakakibari ve diğerleri , 2009 ), farelerin plazma konsantrasyonunun, taze yaban mersini etanol ekstraktının alınmasından 15 dakika sonra zirveye ulaştığı ve daha sonra keskin bir düşüş gösterdiği gösterilmiştir. antosiyaninlerin renal atılımı, alınan dozun %1.88'ini temsil etmektedir. Yabanmersini özünde on üç antosiyanin tespit edildi ve alımdan 60 dakika sonra plazmadaki ana antosiyaninler malvidin-3-glukozit ve malvidin-3-galaktozid idi ( Sakakibari ve ark.2009).). 2 hafta boyunca yaban mersini özü ile beslenen farelerde, plazma seviyeleri maksimum 0.26 µmol/L'ye ulaştı ve antosiyaninler sadece karaciğer, böbrek, testis ve akciğerde bulundu. Beyinde, kalpte, kasta, gözlerde veya beyaz yağda antosiyanin bulunmadı. Araştırmacılar yaban mersini antosiyaninlerinin emildiği ancak belirli organlar tarafından alındıkları sonucuna varmıştır ( Sakakibari ve ark. 2009 ). Bununla birlikte, bir sıçan modelinde antosiyaninlerin beyin alımı bildirildiğinden, farklı türler arasında antosiyaninlerin doku dağılımında farklılıklar olabilir ( Talavera ve ark. 2005 ).

          Git: 4.5. YABANCININ SAĞLIĞA ETKİLERİ
          Yaban mersini, bir incelik olarak kullanımının yanı sıra, gece görüşünü iyileştirmek, damar geçirgenliğini ve kılcal kırılganlığı azaltmak için yaygın olarak kullanılmaktadır; dahası, çoğu ilgi antosiyanin ile ilişkili antioksidan etkilere odaklanmış olsa da, dutun çeşitli sağlık yararları vardır ( Camire 2000 ; Upton 2001 ; Mazza 2002 ; Park ve diğerleri. 2007 ; Zafra-Stone ve diğerleri. 2007 ). Antosiyaninler ve antosiyanin bakımından zengin meyveler ve özler veya meyve sularının antioksidan ve diğer sağlıkla ilgili etkilerini araştıran birçok çalışma olmasına rağmen, yaban mersininin kendisini kullanan sadece birkaçı vardır ve kontrollü insan denemelerinden elde edilen veriler azdır. Gelen Bölümler 4.5.1 ile 4.5.8, yaban mersini de dahil olmak üzere karışık meyve suları veya özleri kullanan çalışmaların yanı sıra sadece yabanmersini meyvesi veya özleri kullanan çalışmalar tartışılmaktadır.

          4.5.1. Bir antioksidan E etkileri
          Antosiyaninler, radikalleri temizleyen ve metal iyonlarını şelatlayan güçlü antioksidanlardır ( Havuz-Zobel ve diğerleri, 1999 ; Mazza ve diğerleri. 2002 ; Prior ve Wu 2006 ). Pek çok bitki ve böğürtlen güçlü antioksidan özelliklere sahiptir ( bitkiler ve baharatlardaki antioksidanlar hakkında 2 . Sıçan hepatositlerinin birincil kültürlerinde, yaban mersini özütünün hücreleri oksidatif hasara karşı koruduğu bulundu ( Valentova ve ark. 2006 ). Upton (2001) tarafından açıklandığı gibi , yaban mersini veya yaban mersini antosiyanin özleri, sıçan karaciğer mikrozomlarını oksidatif hasara ve apolipoprotein B'yi ultraviyole (UV) kaynaklı oksidatif parçalanmaya karşı korur. Hayvan çalışmaları çelişkili sonuçlar gösteriyor. Bir sıçan çalışmasında, antosiyanin açısından zengin bir ekstrakt ile 14 haftalık takviyeden sonra idrar 8-OHdG'de (8-oxodG olarak da bilinir ve oksidatif stresin bir biyobelirteci; Lee, Chung ve Benzie 2010 ) önemli bir değişiklik bildirilmemiştir. yaban mersini de dahil olmak üzere karışık meyvelerden ( Lala ve ark. 2006)). Bununla birlikte, yaban mersini özü ile beslenen OXYS sıçanlarında beyinde malondialdehitte (lipid peroksidasyonunun bir biyolojik belirteci ; Benzie 1996 ) önemli bir düşüş görüldü (0.35 g/kg diyet dahil 2 g kurutulmuş sulu ekstrakt; Kolosova ve ark. 2006 ). Bu sıçan türü, Wistar sıçanlarına kıyasla hızlandırılmış yaşlanma ve daha yüksek oksidatif stres gösterir ve ilginç bir şekilde, Wistar sıçanları yaban mersini ile ilgili etkiler göstermedi, bu da yaban mersininin antioksidan etkilerinin yalnızca yüksek oksidatif stres durumlarında görülebileceğini düşündürür. Yaban mersini de dahil olmak üzere altı yenilebilir meyveden oluşan bir kombinasyon özütünün (OptiBerry), hiperbarik oksijene maruz bırakılan bir hayvan modelinde “tüm vücut senaryosunda benzersiz antioksidan potansiyeli” gösterdiği rapor edilmiştir ( Bagchi ve ark. 2006).). Yabanmersini özü verilen (diyette ağ/ağ %1) ve doksorubisin (DOX) toksisitesine (15 mg/kg intraperitoneal DOX enjeksiyonu ile indüklenen) maruz bırakılan sıçanlarda, serumda daha düşük lipid peroksitleri ve kalp kasında yüksek glutatyon (GSH) vardı. kardiyak lipid peroksit seviyelerinde hiçbir farklılık görülmemesine rağmen, kontrol hayvanları ile karşılaştırıldığında hücreler ( Choi ve ark. 2010 ). Kısıtlama ile strese giren farelerde, karaciğer hasarında belirgin artışlar ve bu stresle ilişkili reaktif oksijen türleri (ROS) seviyeleri, yaban mersini özü uygulanarak normal seviyelere geri yüklendi ve ayrıca gelişmiş mitokondriyal kompleks II aktivitesi, yüksek sodyum/potasyum ATPaz aktivitesi vardı. ve yaban mersini tedavisi ile yüksek mitokondriyal membran potansiyeli ( Bao ve ark. 2010 ).

          Hayvan çalışmalarında görülen umut verici etkilerin aksine, yaban mersini de dahil olmak üzere karışık sebze ve meyvelerle takviye edildikten sonra insan gönüllülerinde lipid peroksidasyonu üzerinde herhangi bir etki görülmedi ( Freese ve ark. 2004 ). Genel olarak, kontrollü insan takviyesi çalışmalarının çoğu sağlıklı denekler üzerinde gerçekleştirilir ve biyobelirteç değişiklikleriyle ilgili olarak yanıt verme potansiyeli sınırlıdır. Antioksidanla ilgili etkilere bakmak için daha iyi hedef gruplar, yaşlılar, yüksek kalp hastalığı riski taşıyanlar veya diyabetik hastalar gibi daha yüksek oksidatif stres altındaki insanlardır. Bugüne kadar, yaban mersini takviyesinin insan deneklerde antioksidan durumu ve oksidatif stres üzerindeki etkilerine ilişkin yayınlanmış yalnızca bir rapor vardır ( Karlsen ve ark. 2010 ). Konular ( n= 31), 4 hafta boyunca 330 mL/gün yaban mersini suyu (1 L'ye seyreltilmiş) ile desteklenmiştir. Ancak sonuçlar, 31 kontrol denekle karşılaştırıldığında, bu deneklerde antioksidan durumunun veya oksidatif stresin biyobelirteçlerinde önemli bir değişiklik olmadığını gösterdi ( Karlsen ve ark. 2010 ).

          Yaban mersini antosiyaninlerinin antioksidan içeriği ve etkisi ile ilgili olarak burada iki uyarı noktası sunulmaktadır. İlk olarak, denemelerde kullanılan yaban mersini özlerinin çoğu, antosiyanin içeriğine göre karakterize edilmemiş veya standardize edilmemiştir. Antosiyanin içeriğindeki değişiklik, ekstraktların antioksidan içeriğini etkiler. Grubumuz tarafından ticari yaban mersini ürünlerinin antioksidan kapasitesinin in vitro testi şaşırtıcı sonuçlar gösterdi ( Lee 2008 ). Ferrik indirgeme/antioksidan güç yeteneği (FRAP) tahlili kullanılarak ( Benzie ve Strain 1999 ), çeşitli menşe ülkelerinden 11 ticari toz yabanmersini ekstresinin toplam antioksidan kapasitesi test edildi. Değerler <20 ila >2000 µmol/g arasında değişmektedir ( Lee 2008). FRAP değeri ile antosiyanin içeriği arasında güçlü bir korelasyon vardı (r > .96: p < .001). İlginç bir şekilde, ticari yaban mersini ürünlerinin antosiyanin içeriğinin 250 mg/g'ye standardize edildiği veya en azından yüksek olduğu varsayılırken, 11 ticari ürünün sadece 5'inde herhangi bir antosiyanin içeriği belirtilmiş ve 5 üründen 3'ünde << 80 mg/g. Ayrıca, biri hariç tüm ürünlerin gerçek antosiyanin içeriği, aynı zamanda düşük FRAP değerleriyle birlikte <60 mg/g idi ( Lee 2008 ). Belirtilen 250 mg/g antosiyanin içeriğine sahip bir üründe ölçülen içerik <10 mg/g idi. İkincisi, in vitro antioksidan aktivite, in vivo etkiyi yansıtmayabilir ( Pool-Zobel ve ark. 1999 ; Halliwell 2007). Antioksidan fitokimyasalların moleküler etkisi, antioksidan aktiviteden bağımsız veya dolaylı olarak antioksidan aktivite ile ilişkili olabilir, konsantrasyonla değişebilir veya sadece diğer biyoaktiflerin varlığında veya belirli redoks koşulları altında ortaya çıkabilir ( Halliwell ve Gutteridge 2007 ; Packer ve Cadenas 2007 ; Benzie ve Wachtel -Galor 2010). Bu nedenle, antosiyaninler in vitro güçlü antioksidanlar olmalarına ve taze yaban mersini bunların zengin bir kaynağı olmasına rağmen, tüm ticari yabanmersini ürünlerinin önemli miktarlarda yabanmersini antosiyaninleri içerdiği veya emilen antosiyaninlerin in vivo olarak doğrudan antioksidanlar olarak hareket ettiği varsayılamaz. Gelecekte, yaban mersini özleri ile yapılan denemelerde, bilinen antosiyanin içeriğine sahip standart bir ürün kullanılmalı ve sağlık yararları arayan çalışmalar, hem antioksidan hem de antioksidan olmayan etkilerin çok çeşitli biyolojik belirteçlerini içermelidir.

          4.5.2. G enoprotective ve bir nticancer e fektleri
          Her üç kişiden biri hayatlarının bir noktasında kanser teşhisi alacaktır ( WCRF 2007 ). Kanser tedavisi zorludur ve çoğu zaman başarısızdır. Kanser, hücre bölünmesini ve büyümesini kontrol eden anahtar genlerdeki mutasyonların neden olduğu bir hastalıktır. DNA'ya verilen hasar, bu tür mutasyonların olasılığını artırır ve DNA'yı zararlı ajanlardan koruduğu, başlangıç ​​DNA hasarını azalttığı veya DNA onarımını arttırdığı bulunan herhangi bir biyoaktif gıda veya bileşen, potansiyel bir kanser önleyici ajandır ( Collins 1999 ; Duthie 2007 ; Halliwell). 2007 ; Kim ve diğerleri 2009). DNA'ya verilen hasar birçok tipte olabilse ve birçok farklı süreç ve ajandan kaynaklanabilse de, oksidasyonun neden olduğu hasarın anahtar faktör olduğu düşünülmektedir. Kronik inflamasyon ROS yükünü arttırır ve önemli bir kanser risk faktörüdür ( Aggarwal, Vijayalekshmi ve Sung 2009 ). Diyet, önemli bir risk modülatörüdür ( WCRF 2007 ; Benzie ve Wachtel-Galor 2009 ; kanser önleme ve tedavisinde şifalı otlar ve baharatlar hakkında Bölüm 17'ye bakınız ). Çoğu epidemiyolojik veri karışık meyve ve sebzelerin potansiyel antikanser aktivitesine odaklanırken, çok azı tek tek meyve türlerine odaklanır. Bununla birlikte, çileklerin antikanser potansiyeli vardır ( Zafra-Stone ve ark. 2007 ; Seeram 2009) ve yaban mersini tek başına veya diğer meyvelerle birlikte kullanan deneysel çalışmalardan elde edilen bazı veriler vardır.

          In vitro çalışma ve hayvan tümörijenik modelleri, meyve antosiyaninlerinin antioksidan aktivite yoluyla kanseri önleyici ve baskılayıcı aktiviteye sahip olduğunu göstermiştir; antiproliferatif, apoptotik, anti-anjiyojenik ve anti-inflamatuar etkiler; ve bunun sonucunda faz II enzim indüksiyonu ve diğer sitoprotektif etkilerle birlikte antioksidan tepki elementini (ARE) indükler ( Hou 2003 ; Bagchi ve diğerleri. 2004 ; Lala ve diğerleri. 2006 ; Duthie 2007 ; Zafra-Stone ve diğerleri. 2007 ; Wang ve Stoner 2008). ; Seeram 2009 ; Benzie ve Wachtel-Galor 2010 ; Matsunaga ve diğerleri 2010). Diğer genoproteksiyon mekanizmaları, antosiyaninlerin DNA ile doğrudan etkileşimini içerebilir. Doğal antosiyaninlerin DNA ile interkalasyon yaparak bir DNA kopigmentasyon kompleksi oluşturduğu rapor edilmiştir ( Sharma ve Sharma 1999 ; Mas ve diğerleri 2000 ; Kong ve diğerleri 2003 ). Bu tripleks stabilizasyon özelliği, antosiyaninlerin, DNA'yı oksidatif hasara karşı korumanın yanı sıra gen ekspresyonunu düzenlemeye yardımcı olabileceğini düşündürmektedir ( Sharma ve Sharma 1999 ; Mas ve ark. 2000 ). Antosiyaninlerin DNA'yı çeşitli ajanlar (UV ışıması, hidrojen peroksit, tert -butil hidroperoksit) tarafından indüklenen oksidatif strese karşı in vitro koruduğu gösterilmiştir ( Lazzé et al. 2003 ; Seeram 2008; Svobodová, Zdařilová ve Vostálová 2009 ). Bununla birlikte, in vitro çalışmalar için kullanılan dozların (100 μM veya daha fazla), antosiyaninlerin diyetle alınması yoluyla plazmada ulaşılabilen değerlerden çok daha yüksek olduğu belirtilmektedir. Hayvan besleme çalışmalarında, antosiyaninlerin ve meyvelerin kanserden kimyasal önleyici ve terapötik etkileri çeşitli modellerde gösterilmiştir ( Hou 2003 ; Prior ve Wu 2006 ; Choi ve diğerleri 2007 ; Zafra-Stone ve diğerleri 2007 ; Seeram 2008 ). İyi tasarlanmış insan deneysel çalışmalarından elde edilen ikna edici kanıtlar olmamasına rağmen, antosiyaninlerin in vitro ve hayvan çalışmalarından kanserin kemopreventif etkilerine ilişkin klinik çalışmaları desteklemek için yeterli sağlam kanıt bulunmaktadır (Thomasset ve Teller ve ark. 2009 ).

          Yaban mersini spesifik olarak araştıran kanserle ilgili çalışmalara atıfta bulunularak, bir hücre kültürü modelinde bir heksan/kloroform özütünün bir faz II detoksifikasyon enzimini (kinin redüktaz) indüklediği rapor edilmiştir ( Upton 2001 ). Ksenobiyotiklerin detoksifikasyonu kanserin önlenmesi için önemlidir. Ekstrakt, kanserin ilerlemesiyle bağlantılı bir enzim olan ornitin dekarboksilazın aktivitesini etkilemedi; ancak iki meme kanseri hücre hattının büyümesini engelledi ( Madhavi ve diğerleri, 1998 ). İlginç bir şekilde, yaban mersininin ticari bir antosiyanin açısından zengin özütünün kolon kanseri hücrelerinin büyümesini engellediği, ancak normal kolon hücrelerinin büyümesini etkilemediği gösterildi, bu da kanser hücrelerine karşı olası bir spesifik etkiyi düşündürdü ( Lala ve ark. 2006).). İnsan kanser hücrelerinde (HL60 lösemi ve HCT116 kolon kanseri hücreleri) apoptoz indüksiyonu için test edilen 10 farklı meyvenin etanolik özütleri arasında, yaban mersini özütünün en etkili olduğu bildirildi. İlginç bir şekilde, delphinidin ve malvidin aglikon, HL60 hücrelerini inhibe ederken, delphinidin ve glikoziti, ancak malvidin ve glikoziti değil, HCT116 hücrelerini inhibe etti ( Katsube ve diğerleri, 2003 ). Yaban mersini içindeki ana antosiyanin Delphinidin'dir ( Tablo 4.1 ).

          Bir hayvan çalışmasında, yüksek doz yaban mersini özü (diyette %10 w/w, günde kilogram başına yaklaşık 5.5 g antosiyanin sağlayan) ile beslenen genetik kolon adenomu olan sıçanlarda bağırsak adenomu sayısı %15-30 oranında önemli ölçüde azaldı. ( . Mutanen ve al, 2008 ). Benzer bulgular, ticari bir yaban mersini özü (mirtoselect daha düşük bir dozu ile gösterildi ® ; antosiyanin kilogramı başına günde yaklaşık 0.5 g temin diyet, ağırlık / ağırlık% 0,3 arasında bir günlük dozda, Cooke ve ark 2006 ).Bu dozaj, insan alımı açısından yaklaşık 740 g taze yaban mersini'ne eşittir.Daha yakın zamanlarda, yaban mersini özütünün, hücre büyümesini doza bağımlı olarak inhibe ettiği ve kültürlenmiş meme kanseri hücrelerinde apoptoz indüksiyonunu desteklediği gösterilmiştir (MCF7- GFP-tubulin meme kanseri hücreleri;Nguyen et al. 2010 ). Daha yüksek dozlarda (0.5-1.0 mg/mL), yaban mersini özü, G(2)/M fazında hücre döngüsünü durdurdu ve mikrotübül polimerizasyonunu inhibe etti ( Nguyen ve ark. 2010 ). Bir DNA mikrodizi çalışmasında, yaban mersini özü ile tedavi edilen makrofajlarda bir anti-inflamatuar gen aktivasyonu/inhibisyon profili görülmüştür ( Chen ve ark. 2008 ). Bu bölümde daha önce belirtildiği gibi, inflamasyon kanser için önemli bir risk faktörüdür. Yaban mersininin bir anti-inflamatuar etkisinin moleküler kanıtı klinik çalışmada doğrulanırsa, yaban mersininin kanser önlemede kullanımını destekleyecektir. 25 kolorektal kanser hastasının pilot çalışmasında, antosiyanin standardize yaban mersini özütü (mirtocyan ®günde 0,5 ile 2 g arasında antosiyanin sağlayan) ameliyattan 7 gün önce verildi ( Thomasset ve Berry ve ark. 2009 ). 7 gün sonra, yaban mersini antosiyaninleri ve bunların glukuronid ve metil metabolitleri plazmada ve ayrıca tümör dokusunda (en yüksek yaban mersini özü dozunda 179 ng/g doku) tespit edildi ve plazma seviyelerinin dozla ilişkili olduğu bulundu. Tümör dokusu, yaban mersini değerlerine göre proliferasyonda %7'lik bir azalma gösterdi ve en düşük dozda görülen plazma insülin benzeri büyüme faktörü-1'de (IGF-1) küçük ama anlamlı bir azalma oldu ( Thomasset ve Berry ve ark. 2009). ). İnsan çalışmasından elde edilen bu ön veriler, yaban mersini antosiyaninlerinin kanser kemoprevansiyonunda daha ileri klinik çalışmaları için önemli ve açık destek sağlar. 4.5.3. Cı ardioprotective e fektleri


          Tüm dünyada, KVH önde gelen ölüm nedenidir. CVD'nin başlıca risk faktörleri arasında merkezi obezite, diyabet, hipertansiyon, yüksek lipit seviyeleri ve yüksek ürik asit seviyeleri bulunur. Artan oksidatif stres de katkıda bulunabilir ve inflamasyon önemli bir faktördür. KVH'nin altında yatan ana faktör olan ateroskleroz, vasküler endoteldeki oksidatif süreçler ve hasar ile ilişkili inflamatuar bir süreçtir ( Libby, Ridker ve Maseri 2002 ). Bu nedenle, antosiyaninlerin anti-inflamatuar ve antioksidan etkileri, yaban mersini ve diğer meyvelerin potansiyel kardiyoprotektif etkileri ile ilgilidir. Antihipertansif, lipid düşürücü, hipoglisemik ve antiobezite etkileri de kardiyoprotektif olacaktır ( Zafra-Stone ve diğerleri 2007 ; Erlund ve diğerleri 2008 ).

          Lipopolisakkarit (LPS) ile uyarılan yaban mersini ile muamele edilmiş makrofajlarda gen ekspresyonu, bir anti-inflamatuar profil gösterdi ( Chen ve diğerleri, 2008 ). Ayrıca, kontrollü bir insan takviyesi denemesi, 4 hafta boyunca yaban mersini suyu alan 31 deneğin plazmasında inflamatuar biyobelirteç konsantrasyonunun azaldığını gösterdi ( Karlsen ve ark. 2010 ) . protein (hsCRP), subklinik inflamasyonun duyarlı bir biyobelirteç ve CVD'nin bir öngörücüsü ve proinflamatuar sitokin interlökin 6 (IL-6). Plazma kolesterolü, trigliseritler veya ürik asit konsantrasyonları üzerinde önemli bir etki görülmedi ( Karlsen ve ark. 2010). Bir hayvan çalışmasında, sıçanları yabanmersini yaprağı ekstresi (3 g/kg/gün) ile 4 gün boyunca besledikten sonra plazma trigliseritleri azaldı ( Cignarella ve diğerleri, 1996 ). Bununla birlikte, V. myrtillus L.'nin meyveleri değil yapraklarının kullanıldığı ve etkilerin esas olarak koyu renkli meyvelerde bulunan antosiyaninlerle ilgili olmayabileceği belirtilmektedir. Her gün 100 g bütün yaban mersini alan 35 denek üzerinde yapılan kontrollü bir insan çalışmasında, trombosit fonksiyonu, kan basıncı ve yüksek yoğunluklu lipoprotein (HDL)-kolesterolün tamamı iyileştirildi ( Erlund ve ark. 2008).). Ancak, günlük yaban mersini takviyesine ek olarak, denekler çalışma sırasında çeşitli meyvelerin bir karışımını aldı. 4 hafta boyunca üzüm çekirdeği, çam kabuğu, yaban mersini ve kırmızı şarap karışımı verilen 23 sağlıklı gönüllü üzerinde yapılan bir araştırma, yüksek yağlı bir öğünün neden olduğu endotel fonksiyonundaki akut bozulmada önemsiz bir azalma olduğunu göstermiştir ( Barringer, Hatcher ve Sasser 2008 ). . Başka bir insan çalışmasında, 60 orta yaşlı dislipidemik Çinli deneğe yaban mersini ve frenk üzümünden ( Ribes nigram ) karışık antosiyaninler ekstrakt (320 mg/gün) olarak 12 hafta boyunca verildi ( Qin ve ark. 2009).). Sonuçlar, düşük yoğunluklu lipoprotein (LDL)-kolesterol (ortalama düşüş yaklaşık %14) ve HDL-kolesterolde (ortalama artış yaklaşık %14) önemli gelişmeler gösterdi. Plazma toplam kolesterol, trigliseritler veya apolipoproteinlerde önemli bir değişiklik görülmedi, ancak kolesteril ester transfer proteininin (CETP) plazma konsantrasyonu önemli ölçüde azaldı ve CETP'deki değişiklik, lipidlerdeki değişikliklerle korele oldu. Aynı grup tarafından yapılan bir in vitro çalışma, siyanidin-3-O-glukozitin insan HepG2 hücrelerinde CETP aktivitesini azalttığını gösterdi ve araştırmacılar, yaban mersini ve böğürtlen antosiyanin karışımının, CETP aktivitesini inhibe ederek ve hücresel kolesterolü değiştirerek insan deneklerinde lipidleri iyileştirdiği sonucuna vardılar. dışa akış ( Qin ve diğerleri, 2009 ).

          Kan basıncı ve damar sağlığı ile ilgili olarak, yaban mersini meyvesi antosiyaninlerinin düz kas kasılmasını ve trombosit agregasyonunu engellediği bildirilmiştir ( Upton 2001 ). Bunlar potansiyel olarak antitrombotik ve antihipertansif etkilerdir ve kardiyoprotektif etkileri vardır. Yaban mersininin olası antihipertansif etkileri, hücrelerde in vitro olarak anjiyotensin dönüştürücü enzim (ACE) aktivitesinin inhibisyonunun bulunmasıyla da önerilmektedir ( Persson, Persson ve Andersson 2009 ). Yabanmersini özünde (0.00625-0.1 mg/mL) 10 dakika süreyle inkübe edilmiş insan göbek damarlarından alınan endotel hücrelerinde ACE aktivitesinin anlamlı, doza bağlı inhibisyonu görülmüştür ( Persson, Persson ve Andersson 2009).). İlginç bir şekilde, bireysel antosiyanidinlerin (siyanidin, delphinidin ve malvidin) hiçbir engelleyici etkisi yoktu ve araştırmacılar, ACE-inhibisyonunun yaban mersini içindeki belirli antosiyanin karışımına bağlı olduğu sonucuna vardılar ( Persson, Persson ve Andersson 2009 ). Yaban mersini antosiyaninlerinin bir hayvan modelinde iskemi reperfüzyon hasarına karşı koruduğu ve lökosit yapışmasını azalttığı ve kan perfüzyonunu iyileştirdiği rapor edilmiştir ( Bertuglia, Malandrino ve Colantuoni 1995 ). Hipertansiyonu indüklemeden önce 12 gün boyunca yaban mersini antosiyaninleri ile beslenen sıçanlarda, kan-beyin bariyerinin geçirgenliği normal tutuldu ve cilt ve aort duvarının vasküler geçirgenliğinde sınırlı bir artış oldu ( Detre ve diğerleri 1986 ).

          Antosiyaninler ve yaban mersini de antiobezite ve hipoglisemik etkilere sahip olduğu bildirilmiştir, bu da kardiyoprotektif faydalar sağlayacaktır. Bunlar Bölüm 4.5.5'te tartışılacaktır .

          4.5.4. Bir nti- ben nflammatory E fektleri
          Enflamasyon koruyucu bir mekanizmadır, ancak kronik enflamasyon oksidatif stresi arttırır ve KVH ve kanser dahil olmak üzere yaşa bağlı birçok hastalığın temelini oluşturur ( Libby, Ridker ve Maseri 2002 ; Halliwell ve Gutteridge 2007 ; Aggarwal ve ark. 2009 ). Birçok çalışma, yaban mersininde bulunan baskın fenolik bileşikler olan antosiyaninlerin, anti-inflamatuar etkilere sahip olduğunu göstermektedir ( Karlsen ve diğerleri. 2007 ; Chen ve diğerleri. 2008 ; Dreiseitel ve diğerleri. 2008 ; Kim ve diğerleri. 2009 ). Önerilen mekanizmalar, hücresel proteinlerin bozunmasını kontrol eden proteazom aktivitesinin engellenmesini içerir ( Dreiseitel ve ark. 2008).) ve enflamatuar yanıtta yer alan genlerin ekspresyonunu kontrol eden nükleer faktör kB (NF-kB) aktivasyonunun inhibe edilmesi ( Karlsen ve diğerleri. 2007 ; Chen ve diğerleri. 2008 ). Sağlıklı denekler tarafından 3 hafta süreyle Medox (300 mg antosiyanin sağlayan yaban mersinlerinden elde edilen saflaştırılmış antosiyaninlerin ticari bir ürünü) takviyesi, birkaç NFκB tarafından düzenlenen proinflamatuar kemokinlerde ve immün düzenleyici sitokinlerde bir azalma ile ilişkilendirildi ( Karlsen ve ark. 2007 ) -up çalışması, 4 hafta boyunca 330 mL/gün yaban mersini suyu alan 31 deneğin plazmasında hsCRP ve inflamatuar sitokin düzeylerinde azalma olduğunu gösterdi ( Karlsen ve ark. 2010). Oksidatif stres, iltihaplanma hasarına aracılık edebileceğinden, yaban mersininin antioksidan özellikleri, bildirilen anti-inflamatuar etkilerin en azından bir kısmından sorumlu olabilir. Bununla birlikte, doğrudan antioksidan etkiler dışındaki mekanizmalar tarafından seçici gen aktivasyonu ve inhibisyonu muhtemeldir ( Chen ve ark. 2008 ; Benzie ve Wachtel-Galor 2010 ).

          4.5.5. H ypoglycemic e fektleri
          Yabanmersini bitkisinin antidiyabetik özelliklere sahip olduğu bilinmektedir ve meyveleri ve yaprakları (ve diğer Vaccinium türlerininkiler) yüzyıllardır diyabet semptomlarını iyileştirmek için kullanılmıştır ( Cignarella ve diğerleri 1996 ; Martineau ve diğerleri 2006 ; Ghosh). ve Konishi 2007 ; Cravotto ve diğerleri 2010 ). 685 İtalyan bitki uzmanıyla yapılan bir ankette yaban mersini, glisemik kontrolün iyileştirilmesi için önerilen bitkisel ilaçlar listesinde dördüncü sırada yer aldı ( Cicero, Derosa ve Gaddi 2004 ). Yaban mersininin bildirilen hipoglisemik etkisi, insülin direnci ve B hücre yetmezliğinin neden olduğu oldukça yaygın bir durum olan tip 2 diyabetin önlenmesine veya kontrolüne yardımcı olmak için arzu edilen bir etkidir.ADA 2010 ). Tip 2 diyabet, artan oksidatif stres, enflamasyon ve dislipidemi ile ilişkilidir ve buna artan bir kardiyovasküler hastalık, kanser ve katarakt ve retinopati yoluyla görme kaybı riski eşlik eder ( Brownlee 2005 ; Jee ve ark. 2005 ; Choi ve ark. 2008 ; ADA 2010 ).

          Yaban mersininin hipoglisemik etkisi, kısmen enzim aktivitesine, özellikle a-glukosidaz aktivitesine müdahale ile ( McDougall, Kulkarni ve Stewart 2008 ) ve ayrıca insülin sekresyonu ve glukoz taşınması üzerindeki etkilerle aracılık edilebilir . Antosiyaninlerin, test edilen farklı antosiyaninler arasında en büyük etkiyi gösteren siyanidinler ve delphinidinler (yaban mersini içindeki başlıca antosiyaninler) ile kültürlenmiş kemirgen pankreas B hücrelerinden insülin salgılanmasını uyardığı bulunmuştur ( Jayaprakasam ve diğerleri, 2005 ). Ek olarak, yaban mersini ile aynı aileye ait olan, 12,5 μg/mL'de düşük çalı yaban mersininin, insülin yokluğunda kas hücrelerine ve adipositlere glikoz taşınmasını arttırdığı gösterilmiştir ( Martineau ve ark. 2006 ).

          Streptozotosin ile indüklenen diyabetik farelere (4 gün boyunca 3 g/kg/gün) yaban mersini yapraklarının su-alkol özütünün verildiği bir hayvan çalışmasında, plazma glukozunda önemli bir düşüş (%26) görülmüştür ( Cignarella ve ark. 1996). ). Vaccinium yaban mersini fenolik bakımından zengin bir ekstrakt (yaklaşık 287 mg/g antosiyanin içerir) ve antosiyanin açısından zengin bir fraksiyonun (yaklaşık 595 mg/g içerir) uygulanmasından sonra kan şekeri önemli ölçüde azaldı (sırasıyla %33 ve %51) diyabetik (C57b1/6J) farelere 500 mg/kg dozunda ekstrakte edin ( Grace ve diğerleri 2009 ). Saf antosiyaninler (300 mg/kg) ile gavaj tedavisinde, malividin-3-O-glukozitin bu hayvanlarda önemli bir hipoglisemik etkiye sahip olduğu bulundu, ancak delphinidin-3-O-glukozit yoktu (Grace et al. 2009 ). Tablo 4.1'de gösterildiği gibi , yaban mersininin malvidin-3-O-glukozit konsantrasyonu %3.35'tir ( Upton 2001 ). Yaban mersini içeren bir bitkisel preparasyon olan 20 mg/kg dozda “antidiyabet” verildikten sonra sırasıyla 120 dakika ve 7 gün sonra alloksan ile indüklenen diyabetik farelerde serum glikoz ve fruktozaminde önemli düşüşler gösterildi ( Petlevski ve ark. 2001). ).

          Obezite, tip 2 diyabet için güçlü bir predispozan faktördür. Berry polifenolleri, lipaz gibi sindirim enzimlerini inhibe ederek ve böylece yağ emilimini azaltarak obeziteyi önlemeye yardımcı olabilir ( McDougall, Kulkarni ve Stewart 2008 ). Siyanidin-3-glukozitin, yüksek yağlı bir diyetle beslenen farelerde obezite gelişimini baskıladığı ve insan adiposit fonksiyonunu düzenlediği gösterilmiştir ( Tsuda 2008).). İnsan preadipositleri, subkutan yağ dokusundan toplandı, kültürlendi ve 24 saat boyunca antosiyaninlerle tedavi edilmeden önce adipositlere farklılaştırıldı. Bir anti-enflamatuar sitokin olan adiponektin, yukarı regüle edildi ve proenflamatuar sitokin IL-6'nın ve ayrıca plazminojen aktivatör inhibitörü-1'in (PAI-1) aşağı regülasyonu vardı; antosiyanin tedavisi ayrıca AMP/adenosin trifosfat (ATP) oranını artırmadan adipositlerde adenosin monofosfat (AMP) ile aktive olan protein kinazı (AMPK) aktive etti ( Tsuda 2008). Bu değişiklikler birlikte, antosiyaninlerin, insülin direnci, hipertansiyon ve sıklıkla tip 2 diyabete ilerleyen dislipidemi ile ilişkili giderek yaygınlaşan bir durum olan metabolik sendromun önlenmesindeki rolüne işaret etmektedir. Bir takip çalışmasında, Tsuda ve çalışma arkadaşları, diyabetik farelerin diyetine eklenen yabanmersini özütünün (27 g/kg diyet, antosiyanin içeriği 10 g/kg diyet verdi) serum glikozunu düşürdüğünü ve insülin duyarlılığını iyileştirdiğini bildirdi ( Taikawa ve diğerleri 2009). Yaban mersini ile beslenen ve kontrol hayvanları arasında vücut ağırlığı veya serum adiponektin seviyelerinde herhangi bir fark yoktu, ancak yaban mersini özütünün antidiyabetik etkileri, beyaz yağ dokusu ve iskelet kası ve karaciğerde AMPK aktivasyonu ile ilişkilendirildi ve buna artan glikoz taşıyıcısı eşlik etti 4 (GLUT 4) beyaz yağ ve iskelet dokusunda ve alt hepatik glukoneogenezde ( Taikawa ve ark. 2009 ).

          Çileklerin (örneğin kızılcık, chokeberry) hipoglisemik etkilerine dair bazı yayınlanmış insan çalışmaları olmasına rağmen, insan denemelerinden elde edilen güçlü kanıtlar eksiktir ( Matsui ve diğerleri 2006 ; Helmstädter ve Schuster 2010 ). Bildiğimiz kadarıyla, yaban mersini ile diyabet hastaları üzerinde yayınlanmış kontrollü insan çalışması yoktur. Yaban mersini ile yayınlanan iki insan takviyesi çalışması ( Qin ve ark. 2009 ; Karlsen ve ark. 2010) yüksek KVH riski taşıyan denekler üzerinde çalıştı, ancak diyabetik değillerdi. Normal glukoz toleransı olan deneklerde yaban mersininin önemli etkilerinin görülmesi olası değildir 12 hafta boyunca yaban mersini ve frenk üzümü antosiyanin takviyesi (120 mg/gün antosiyaninler) alan 60 diyabetik olmayan dislipidemik denekte plazma glukoz seviyelerinde herhangi bir farklılık görülmedi ( Qin ve diğerleri 2009 ). Tarafından yapılan çalışmada, Karlsen et al. (2010) , CVD için en az bir risk faktörü olan deneklerde 330 mL/gün yaban mersini suyu ile 4 haftalık takviyenin etkisini araştırmış, hiçbir glikoz verisi gösterilmemiştir.

          Yaban mersininin antidiyabetik etkileri hakkında insan verisi olmamasına rağmen, sayısız in vitro ve hayvan çalışması, yaban mersininin tip 2 diyabetin tedavisinde veya önlenmesinde rolüne dair iyi kanıtlar sunmaktadır. Bu, oldukça yaygın olan bu hastalığın ortaya çıkardığı devasa sosyoekonomik sorun göz önüne alındığında, gelecekteki araştırmaların çok tatmin edici bir alanı olabilir. Artan insülin salgılanmasından ve glikoz taşınmasından elde edilecek açık faydalara ek olarak, yaban mersininin antioksidan, antienflamatuar ve lipid düşürücü etkileri gibi diğer etkileri diyabetin ciddi vasküler komplikasyonlarını geciktirmeye yardımcı olacaktır. Obeziteyi kontrol etmek, birçok tip 2 diyabet vakasını önlemeye yardımcı olacaktır. Ayrıca, hiperglisemi ile hiperglisemi arasında kanser riskinin arttığına dair artan kanıtlar vardır ( Jee ve ark. 2005 ; Stocks ve ark. 2009).). Metabolik Sendrom ve Kanser (Me-Can) Projesi, toplam 500.000'den fazla deneğe sahip altı Avrupa kohortunun geniş bir prospektif çalışmasıdır ve ortalama 10.4 yıllık bir takipten sonra, sonuçlar yüksek kan şekerini bir risk faktörü olarak güçlü bir şekilde desteklemektedir. birçok spesifik bölgede kanser vakası ve kanser ölümü için ( Stocks ve ark. 2009 ). Oksidatif stres, iltihaplanma ve IGF-1 dahil olmak üzere artan miktarda büyüme faktörü de kanser riskini artırır ve tip 2 diyabetlilerde yüksektir. Bir bitkinin veya fonksiyonel bir gıdanın antioksidan, antienflamatuar ve hipoglisemik etkilerinin kombinasyonu, özellikle tip 2 diyabetliler için önemli uzun vadeli faydalar sağlayacaktır ve yaban mersini üzerinde bu grupta bu etkilere odaklanan çalışmalar garanti edilmektedir.

          4.5.6. O küler e fektleri
          Yaban mersini, göz rahatsızlıkları için ve görmeyi teşvik etmede uzun bir kullanım geçmişine sahiptir. Yabanmersininin katarakt, retinopati, maküler dejenerasyon ve gece görüşü dahil olmak üzere görme ve oküler bozuklukların çeşitli yönleri üzerindeki etkilerine dair çok sayıda çalışma yapılmıştır ( Camire 2000 ; Upton 2001 ; Canter ve Ernst 2004 ; Ghosh ve Konishi 2007 ; Zafra tarafından gözden geçirilmiştir) -Taş ve diğerleri 2007). Birçok çalışma, retina anormalliklerinde iyileşme, kılcal damar direncinde artış, lens opaklığı ve miyopi ilerlemesinde yavaşlama ve gelişmiş karanlık adaptasyonu dahil olmak üzere olumlu etkiler göstermiştir. Örneğin, hafif yaşlılık kataraktı olan 50 hasta üzerinde yapılan bir çalışmada, yaban mersini antosiyaninleri artı E vitamini ile 4 aylık takviyenin katarakt ilerlemesini önlemede %97 başarı oranına sahip olduğu bildirildi ( Bravetti, Fraboni ve Maccolini 1989 ). Çift kör, plasebo kontrollü bir çalışma, yaban mersini antosiyaninleri verilen altı denekte, yuttuktan sonraki 1 saat ve saatlerde karanlık adaptasyonun altı kontrol denekle (9 dakika; Zafra-Stone ve ark. 2007). Ancak bunlar ve diğer birçok çalışma küçüktü; yaban mersini artı diğer meyveler veya E vitamini ile birlikte yaban mersini gibi kullanılmış karışık takviyeler; veya kontrolsüzdü. Canter ve Ernst (2004) , yaban mersini özünden elde edilen antosiyaninlerin düşük ışık ve gece görüşü üzerine yayınlanmış 30 çalışmasını gözden geçirdi. 30 çalışmanın sadece 12'si plasebo kontrollüydü ve sonuç, gece görüşünü iyileştirmek için yaban mersini kullanımını önermek için yeterli kesin kanıt olmadığıydı ( Canter ve Ernst 2004 ).

          Bununla birlikte, yaban mersininin oküler bozukluklar ve görme kaybı ile ilgili faydalı etkilerine dair destekleyici bilimsel kanıtlar vardır. Tarafından yapılan bir çalışma Jang ve diğ. (2005) , bir yaban mersini özütünün (100 μM antosiyaninler), hücre zarlarında deterjan benzeri bir bozulmaya ve hücrelerde ışık kaynaklı hasara aracılık eden bir otofloresan pigment olan piridinyum disretinoid A2E'nin fotooksidasyonuna karşı koruduğunu ve etkilerin en azından nedeniyle olduğunu gösterdi. kısmen singlet oksijenin söndürülmesi için. Milbury et al. (2007) , yaban mersini antosiyaninlerinin (1 mg/mL), preinkübe edilmiş retina pigment epitel hücrelerinde heme oksijenaz-1 (HO)-1 ve glutatyon-S-transferaz-pi (GST-pi) oksidatif stres savunma enzimlerini modüle ettiğini göstermiştir. H 2 O'dan önce antosiyanin özütü2 meydan okuma. Şarkı ve ark. (2010) yaban mersini ekstresinin kültürlenmiş korneal limbal epitel hücreleri üzerindeki etkisini incelemiş ve yaban mersininin bu hücrelerin fizyolojik yenilenmesini ve homeostazını desteklediğini göstermiştir. Randomize, çift kör, plasebo kontrollü bir çalışma, incelenen 30 denekten 22'sinde (%73) astenopi semptomlarının ve kontrast duyarlılığının, 4 hafta boyunca 100 mg/gün saflaştırılmış antosiyanin (%85 antosiyanosit oligomerleri; Lee ve diğerleri 2005). Kültürlenmiş retina ganglion hücreleri ile yapılan bir çalışmada, yaban mersini antosiyanositleri kimyasal kaynaklı hücre hasarını ve radikal aktivasyonu inhibe etti ve antioksidanla ilişkili bir etki olabilecek bu nöroprotektif etki, yaban mersini antosiyanositleri (100 μg/göz) kullanıldığında da in vivo olarak görüldü. farelerin vitreuslarına enjekte edildi ( Matsunaga ve ark. 2009 ).

          Esas olarak senil katarakt ve makula dejenerasyonundan kaynaklanan yaşa bağlı görme kaybı, hemen hemen tüm yaşlı kişilerin yaşam kalitesini etkiler. Diyabetik retinopati, 10 yıl veya daha uzun süredir diyabeti olanlarda oldukça yaygındır ve gelişmiş ülkelerde körlüğün önde gelen nedenidir. Hayvan ve hücre kültürü çalışmalarından ve küçük insan denemelerinden, yaş ve diyabetle ilişkili görme kaybı gibi büyük klinik problemin ele alınmasına yardımcı olmak için yaban mersini ile ilgili daha güçlü, kontrollü insan denemelerini garanti altına almak için yeterli kanıt bulunmaktadır.

          4.5.7. N Avrupa koruyucu E etkileri
          Bilişsel gerilemeye yol açan yaşa bağlı dejeneratif hastalıklar olgusu yaygın ve amansızdır. İnme, ister hipertansiyon ister tromboz tarafından tetiklensin, önemli bir ölüm ve sakatlık nedenidir. Yaban mersininin vazodilatör ve anti-inflamatuar etkilerinin, hemorajik ve trombotik felç riskini azaltarak biliş ve nöromotor fonksiyonun korunması ile ilgili olarak önemli etkilere sahip olması beklenebilir. Ayrıca, retina dahil nöronal doku çoklu doymamış yağ asidi bakımından zengindir ve antosiyaninlerin antioksidan özellikleri bu oksidasyona duyarlı bölgeleri koruyabilir ve böylece antosiyaninlerin alınıp alınmadığı henüz net olmasa da beyin ve retina fonksiyonunu koruyabilir. beyin dokusu tarafından. Berry meyveleri ve meyve polifenollerinin nöroprotektif olduğu bildirilmiştir,Zafra-Stone ve ark. 2007 ; Matsunaga et al. 2009 ; Shukitt-Hale, Lau ve Joseph 2009 ). Ticari bir yaban mersini ekstresi (Myrtocyan ® 200 mg / kg günlük olarak intraperitonal uygulama ile 5 gün) kobay farelerine verilmiştir beynin farklı bölgelerinde triiyodotironin taşınmasını arttırmak için rapor edilmiştir, ve yaban mersini teşvik ettiği rapor edilmiştir, kısa süreli hafıza, görme ve hayvanlarda duyusal girdinin kontrolü ( Saija ve diğerleri 1990 ; Cignarella ve diğerleri. 1996 ; Prior ve Wu 2006 ; Zafra-Stone ve diğerleri. 2007)). Bununla birlikte, çileklerin ve bileşenlerinin nöroprotektif etkileri üzerine yapılan çalışmaların çoğu, kültürlenmiş hücrelerde ve hayvanlarda yapılmıştır ve bilberry'yi özel olarak kullanan bilişle ilgili çalışmalar eksiktir. 4.5.8. Bir ntimicrobial e fektleri


          Bitkilerin ve doğal ürünlerin antimikrobiyal etkileri, hücre duvarlarına bakteri bağlanmasının (yapışmanın) inhibisyonu, doğrudan antimikrobiyal öldürme veya bir bitkinin varlığında antibiyotiklerin minimum inhibitör konsantrasyonunun (MIC) düşürülmesiyle kanıtlandığı gibi antibiyotikleri güçlendiren etkiler yoluyla olabilir. tek başına antibiyotiğe kıyasla. Birkaç doğal ürünün antimikrobiyal etkileri olduğu bulunmuştur ( Lee ve ark. 2006 ). Kızılcık ( V . Macrocarpon Ait.) Güçlü antiadezyon özelliklere sahiptir ve yaygın idrar yolları (bkz enfeksiyonları önlemek için kullanılır Bölüm 6 kızılcık). Diğer araştırmacılar, meyvelerin Helicobacter pylori üzerindeki yapışma önleyici etkilerini bildirmiştir.ve ayrıca dut özlerinin H. pylori'ye karşı antibiyotik klaritromisinin antimikrobiyal etkilerini arttırdığını ( Chatterjee ve ark. 2004 ).

          Yabanmersini ve diğer dut meyvelerinin yanı sıra saflaştırılmış dut fenoliklerinin, Salmonella ve Staphylococcus aureus dahil olmak üzere insan patojenlerine karşı doğrudan antimikrobiyal etkiler gösterdiği rapor edilmiştir ( Puupponen-Pimiä ve diğerleri 2005a , b ). İlginç bir şekilde, saf fenolik bileşiklerin (meyve özlerinin aksine) sadece gram-negatif bakterileri ( Salmonella türleri ve Escherichia coli içerir ) inhibe ettiği bulundu ve etkiler saf fenolik bileşiklerin ( Puupponen-Pimiä) hidroksilasyon derecesi ile ilgiliydi. ve diğerleri 2005a , b). Berry özlerinin saf fenolik bileşiklerden etkilenenleri engellediği bulundu; ayrıca, özler sadece H. pylori'nin değil, aynı zamanda gram pozitif organizmalar olan Bacillus , Clostridium ve Staphylococcus'un büyümesini de engelledi . Bu nedenle, bütün meyveler veya bütün meyvelerin özleri, saflaştırılmış özlerden daha antimikrobiyaller olarak daha etkili olabilir. Çeşitli meyvelerin çeşitli organizmalara karşı etkileri farklıdır. Örneğin, cloudberry ( Rubus chamaemorus ) S. aureus üzerinde bakterisidal bir etki gösterirken yaban mersini bakteriyostatik bir etkiye sahipti ( Puupponen-Pimiä et al. 2005a ). Yaban mersininin Salmonella'ya karşı antimikrobiyal etkilerive Staphylococcus , meyve suyuna fenolik salınımını arttıran meyve püresinin enzimatik muamelesiyle arttırıldı; bununla birlikte, işlem sırasında meyve bileşenlerinde yapısal değişiklikler de olmuş olabilir ( Puupponen-Pimiä ve diğerleri 2005a , b ). Yabani çilek, bir yaban mersini suyu inhibe yapışma Yeni bir çalışmada , Streptococcus pneumoniae , insan bronşiyal için (Calu-3) hücreleri, hem de yaban mersini suyu inhibe büyüme S . pnömoni , yaban mersininin etkileri kızılcıktan daha az olmasına rağmen ( Huttunen ve ark. 2010 ).

          Otlar ve diğer doğal ürünlerdeki antimikrobiyal etkilerin bulguları, özellikle son yıllarda ortaya çıkan yeni bulaşıcı hastalıklar nedeniyle önemli ve zamanındadır. S . pnömoni menenjit, orta kulak iltihabı ve pnömoninin başlıca nedenidir. Yiyecek ve suda çeşitli patojenlerin varlığı yaygındır ve toksik sonuçları ciddi olabilir. Mikroplarda antibiyotik direnci ciddi ve giderek artan bir sorundur; dahası, bağışıklık sistemi yaşla birlikte azalır ve popülasyonlarımız yaşlanır. Yaban mersini, antimikrobiyal bir ajan olarak açık bir potansiyel değere sahiptir. Grubumuz tarafından yapılan bir ön çalışmada, yaban mersini metisilin dirençli karşı doğrudan etkisi gösterdi S . aurealar(MRSA), tek başına yaban mersini özü için 1.2 mg/mL MIC ile. Ayrıca, vankomisinin MRSA suşlarına karşı etkisi güçlendirildi. 0,6 mg/mL yaban mersini özü varlığında, vankomisin için MİK, 1,8'den 0,7 μg/mL'ye düşürülmüştür. Bunlar yaban mersininin antibiyotiğe dirençli organizmaların tedavisinde kullanımı için ilginç ve potansiyel olarak önemli bulgulardır.

          Git: 4.6. SONUÇ
          Tarih boyunca böğürtlenler insan beslenmesinin önemli ve değerli bir parçası olmuştur. Meyveler birçok bileşen içerir, ancak meyvelere kırmızı, mavi ve mor renklerini veren fenolik bileşikler olan antosiyaninlerin, antioksidan, antitümorijenik, anti-inflamatuar, hipoglisemik ve antimikrobiyal dahil olmak üzere çok çeşitli sağlıkla ilgili özelliklere sahip olduğu bulunmuştur. Etkileri. Yaban mersini antosiyaninler, özellikle delphinidinler ve siyanidinler açısından zengindir. Bu bileşiklerin biyoyararlı ve biyoaktif olduğuna dair destekleyici kanıtlar vardır. Deneysel çalışmalarda gösterilen moleküler etkiler ve bunların insan sağlığı üzerindeki klinik etkileri Şekil 4.2'de özetlenmiştir.. Bununla birlikte, yaşlanan popülasyonlarımızda kronik ve bulaşıcı hastalıklarla mücadele için olası bir araç olarak yaban mersini için mevcut moleküler kavrayışları ve anlayışı net önerilere dönüştürecek düzeyde ve çeşitli klinik kanıtları sağlamak için standart yaban mersini özlerini kullanan iyi tasarlanmış insan denemelerine ihtiyaç vardır. .
          ŞEKİL 4.2.  Yaban mersini ve yaban mersini antosiyaninlerinin faydalı etkilerine dair moleküler kanıtlar: Yabanmersini ve yaban mersini antosiyaninlerinin faydalı etkilerine dair çeşitli moleküler kanıtlar vardır. ŞEKİL 4.2


          Yaban mersini ve yaban mersini antosiyaninlerinin faydalı etkilerine dair moleküler kanıtlar: Yabanmersini ve yaban mersini antosiyaninlerinin faydalı etkilerine dair çeşitli moleküler kanıtlar vardır. Bu etkilerin insan sağlığı için önemli klinik etkileri vardır. (Daha...)

          Git: REFERANSLAR
          1. Aggarwal BB, Vijayalekshmi RV, Sung B. Kanserin önlenmesi ve tedavisi için inflamatuar yolları hedefleme: Kısa vadeli arkadaş, uzun vadeli düşman. Klinik Kanser Arş. 2009; 15 :425–30. [ PubMed ]
          2. Amerikan Diyabet Derneği (ADA). Diyabet tanısı ve sınıflandırılması. Diyabet bakımı. 2010; 33 :S62–9. [ PMC ücretsiz makale ] [ PubMed ]
          3. Bagchi D, Roy S, Patel V, et al. Yenilebilir meyvelerin yeni bir antosiyanin açısından zengin formülünün güvenlik ve tüm vücut antioksidan potansiyeli. Mol Hücre Biyokimyası. 2006; 281 :197–209. [ PubMed ]
          4. Bagchi D, Sen CK, Bagchi M, Atalay M. Yeni bir antosiyanin açısından zengin meyve özü formülünün anti-anjiyojenik, antioksidan ve anti-kanserojen özellikleri. Biyokimya (Moskova). 2004; 69 :75-80. [ PubMed ]
          5. Bao L, Abe K, Tsang P, Xu JK, Yao XS, Liu HW, Kurihara H. Yabanmersini özü, mitokondriyal disfonksiyonu azaltarak kısıtlama stresinin neden olduğu karaciğer hasarını korur. Fitoterapi. 8 Temmuz 2010. 2010. e doi:10 ​.1016/j.fitote.2010.07.004.pub . [ PubMed ]
          6. Barringer TA, Hatcher L, Sasser HC 4 haftalık flavonoid takviyesinden oluşan yüksek yağlı bir yemekten sonra endotel fonksiyonunun bozulması üzerine potansiyel faydalar. Kanıta Dayalı Tamamlayıcı Alternatif Med. 2008; 10 :1–6. [ PMC ücretsiz makale ] [ PubMed ]
          7. Benzie IFF Lipid peroksidasyonu: Nedenler, sonuçlar, ölçüm ve diyet etkilerinin gözden geçirilmesi. Int J Gıda Bilimi Nutr. 1996; 47 :233-61. [ PubMed ]
          8. Benzie IFF Diyet antioksidanlarının evrimi. J Comp Biochem Physiol (A). 2003; 136 :113–26. [ PubMed ]
          9. Benzie IF F, Strain JJ Ferrik indirgeyici/antioksidan güç testi: Biyolojik sıvıların toplam antioksidan aktivitesinin doğrudan ölçümü ve toplam antioksidan güç ve askorbik asit konsantrasyonunun eşzamanlı ölçümü için değiştirilmiş versiyon. Yöntemler Enzimol. 1999; 299 :15-27. [ PubMed ]
          10. Benzie IF F, Wachtel-Galor S. Uzun süreli vejetaryen diyetlerde biyobelirteçler. Adv Clin Chem. 2009; 47 :170–208. [ PubMed ]
          11. Benzie IF F, Wachtel-Galor S. Vejetaryen diyetler ve halk sağlığı: Biyobelirteç ve redoks bağlantıları. Antioksit Redoks Sinyali. 2010; 13 :175–91. [ PubMed ]
          12. Bertuglia S, Malandrino S, Colantuoni A. Vaccinium myrtillis antosiyanositlerinin hamster yanak kesesi mikrosirkülasyonunda iskemik reperfüzyon hasarı üzerindeki etkisi. İlaç Arş. 1995; 31 :183–7. [ PubMed ]
          13. Bravetti GO, Fraboni E, Maccolini E. E vitamini ve Vaccinium myrtillus antosiyanositleri ile senil kataraktın önleyici tıbbi tedavisi: Klinik değerlendirme. Ann Ottalmol Clin Ocul. 1989; 115 :109–16.
          14. Brownlee M. Diyabetik komplikasyonların patobiyolojisi: Birleştirici bir mekanizma. Şeker hastalığı. 2005; 54 :1615–25. [ PubMed ]
          15. Burdulis D, Sarkinas A, Jasutienè I, Stackivicenè E, Nikolajevas L, Janulis V. Yabanmersini (Vaccinium myrtillus L.) ve yaban mersini (Vaccinium corymbosum L.) meyvelerinde antosiyanin bileşimi, antimikrobiyal ve antioksidan aktivitenin karşılaştırmalı çalışması. Acta Pol Ecz. 2009; 66 :399–408. [ PubMed ]
          16. Camire ME Otlar Botanikler ve Çaylar. Lancaster, PA: Technomic Publishing Company; 2000. Fonksiyonel gıdalar ve nutrasötikler olarak yaban mersini ve yaban mersini; s. 289-319.
          17. Canter PH, Ernst E. Gece görüşü için Vaccinium myrtillus'un (yaban mersini) Anthocyanosides-plasebo kontrollü çalışmaların sistematik bir incelemesi. Oftalmol'den kurtulun. 2004; 49 :38–50. [ PubMed ]
          18. Chatterjee A, Yasmin T, Bagchi D, Stohs SJ Helicobacter pylori'nin in vitro olarak çeşitli meyve özleri ile inhibisyonu, klaritromisine karşı artan duyarlılık ile. Mol Hücre Biyokimyası. 2004; 265 :19–26. [ PubMed ]
          19. Chen J, Uto T, Tanigawa S, Kumamoto T, Fuji M, Hou DX DNA dizisi yoluyla makrofajlarda yaban mersini (Vaccinium myrtillus) tarafından hedeflenen genlerin ekspresyon profili. Nutr Kanser. 2008; 60 :43–50. [ PubMed ]
          20. Choi SW, Benzie IF, Ma SW, Strain JJ, Hannigan BM Akut hiperglisemi ve oksidatif stres: Doğrudan sebep ve sonuç? Serbest Radic Biol Med. 2008; 44 :1217–31. [ PubMed ]
          21. Choi EH, Ok HE, Yoon Y, Magnuson BA, Kim MK, Chun HS Yaban mersini (Vaccinium myrtillus L.) antosiyanin açısından zengin ekstraktın 5-florourasil tarafından indüklenen miyelotoksisiteye karşı koruyucu etkisi. Biyofaktörler. 2007; 29 :55-65. [ PubMed ]
          22. Choi EH, Park JH, Kim MK, Chun HS Sıçanlarda ve farelerde antosiyanin bakımından zengin yaban mersini (Vaccinium myrtillus L.) özü ile doksorubisin kaynaklı toksisitelerin hafifletilmesi. Biyofaktörler. 2010 2010 7 Temmuz; 36 :319-27. epub. [ PubMed ]
          23. Cicero AF G, Derosa G, Gaddi A. Bitki uzmanları glisemik kontrolü iyileştirmek için diyabet hastalarına ne önerir? Bilimsel kanıtların ve potansiyel riskin değerlendirilmesi. Acta Diabetol. 2004; 41 :91–8. [ PubMed ]
          24. Cignarella A, Nastasi M, Cavalli E, Puglisi L. Çeşitli sıçan dislipidemi modellerinde geleneksel bir antidiyabetik tedavi olan Vaccinium myrtillus L. yapraklarının yeni lipid düşürücü özellikleri: Klofibrat ile bir karşılaştırma. Tromb Res. 1996; 84 :311–22. [ PubMed ]
          25. Clifford MN Antosiyaninler-doğa, oluşum ve diyet yükü. J Sci Gıda Tarım. 2000; 80 :1063–72.
          26. Collins AR Oksidatif DNA hasarı, antioksidanlar ve kanser. Biyodenemeler. 1999; 21 :238-46. [ PubMed ]
          27. Cooke D, Schwartz M, Boocock D, Winterhalter P, Steward WP, ​​Gescher AJ, Marczylo TH Siyanidin-3-glukozid ve antosiyanin karışımının ApcMin fare bağırsak kanseri modelinde adenom gelişimi üzerindeki etkisi-doku antosiyanin seviyeleri ile ilişkisi. Int J Kanser. 2006; 119 :2213–20. [ PubMed ]
          28. Cravotto G, Boffa L, Genzini L, Garella D. Fitoterapötikler: 1000 bitkinin potansiyelinin değerlendirilmesi. J Clin Ecz Ther. 2010; 35 :11–48. [ PubMed ]
          29. Detre Z, Jellinek H, Miskulin M, Robert AM Hipertansiyonda vasküler geçirgenlik üzerine çalışmalar: Antosiyanositlerin etkisi. Clin Physiol Biochem. 1986; 4 :143–9. [ PubMed ]
          30. Dreiseitel A, Schreier P, Oehme A, ve diğerleri, editörler. Antosiyaninler ve antosiyanidinler tarafından proteazom aktivitesinin inhibisyonu. Biochem Biophys Res Komün. 2008; 372 :57-61. [ PubMed ]
          31. Duthie S. Berry fitokimyasalları, genomik stabilite ve kanser: Kanserojen süreçlerde çeşitli aşamalarda kemoprevensiyon için kanıt. Mol Nutr Gıda Arş. 2007; 52 :386–7. [ PubMed ]
          32. Erlund I, Kol R, Alfthan G, ve diğerleri, editörler. Berry tüketiminin trombosit fonksiyonu, kan basıncı ve HDL kolesterol üzerindeki olumlu etkileri. J Clin Nutr mıyım? 2008; 87 :323–31. [ PubMed ]
          33. Erlund I, Marniemi J, Hakala P, Alfthan G, Meririnne E, Aro A. Frenk üzümü, yaban mersini ve yaban mersini tüketimi serum kuersetin konsantrasyonlarını arttırır. Eur J Clin Nutr. 2003; 57 :37-42. [ PubMed ]
          34. Freese R, Vaarala O, Turpeinen AM, Mutanen M. Sağlıklı deneklerde sebze, çilek ve elma açısından zengin veya fakir diyetlerden sonra trombosit aktivasyonu veya inflamasyon belirteçlerinde fark yok. Eur J Nutr. 2004; 43 :175–82. [ PubMed ]
          35. Ghosh D, Konishi T. Antosiyaninler ve antosiyanin bakımından zengin özler: Diyabet ve göz fonksiyonundaki rolü. Asia Pac J Clin Nutr. 2007; 16 :200–8. [ PubMed ]
          36. Grace MH, Ribnicky DM, Kuhn P, ve diğerleri, editörler. Düşük çalı yaban mersini, Vaccinium anustifolium Aiton'dan yeni bir antosiyanin açısından zengin formülasyonun hipoglisemik aktivitesi. Bitkisel ilaç. 2009 2009 20 Mart; 16 :406–15. epub. [ PMC ücretsiz makale ] [ PubMed ]
          37. Halliwell B. Oksidatif stres ve kanser: İlerledik mi? Biochem J. 2007; 401 :1–11. [ PubMed ]
          38. Halliwell B, Gutteridge JMC Biyoloji ve Tıpta Serbest Radikaller. 4. baskı. Oxford: Oxford University Press; 2007.
          39. Helmstädter A, Schuster N. Vaccinium myrtillus, çağlar boyunca antidiyabetik bir tıbbi bitki araştırması olarak. Eczane. 2010; 65 :315–21. [ PubMed ]
          40. Hou D.-X. Antosiyaninler tarafından kanser kemoprevensiyonunun potansiyel mekanizması. Curr Mol Med. 2003; 3 :149-59. http://www ​.ukwildflowers.com/ (4 Haziran 2010'da erişildi) [ PubMed ]
          41. Huttunen S, Toivanen M, Arkko S, Ruponen M, Tikkanen-Kaukanen C. Yabani meyve suyu fraksiyonlarının insan bronş hücrelerine bağlanan Streptococcus pneumoniae'ye karşı inhibisyon aktivitesi. Fitoter Araş. 2010. yok. doi: 10.1002/ptr.3240. [ PubMed ]
          42. Jang YP, Zhou J, Nakanishi K, Sparrow JR Antosiyaninler, retinal pigment epitel hücrelerinde fotooksidasyona ve membran geçirgenliğine karşı koruma sağlar. Photochem Photobiol. 2005; 81 :529–36. [ PMC ücretsiz makale ] [ PubMed ]
          43. Jayaprakasam B, Vareed SK, Olsen LK, Nair MG Meyvelerde bulunan biyoaktif antosiyaninler ve antosiyaninler tarafından insülin salgılanması. J Tarım Gıda Kimya. 2005; 53 :28–31. [ PubMed ]
          44. Jee SH, Ohrr H, Sull JW, ve diğerleri, editörler. Koreli erkek ve kadınlarda açlık serum glikozu ve kanser riski. JAMA. 2005; 293 :194–202. [ PubMed ]
          45. Karlsen A, Paur I, Bøhn SV, ve diğerleri, editörler. Yabanmersini suyu, KVH riski yüksek olan deneklerde NF-KB ile ilgili inflamatuar belirteçlerin plazma konsantrasyonunu modüle eder. Eur J Nutr. 2010 2010 2 Şubat; 49 :345–55. epub. [ PubMed ]
          46. Karlsen A, Retterstol L, Laake P, Paur I, Kjolsrud-Bohn S, Sandvik L, Blomhoff R. Antosiyaninler, monositlerde nükleer faktör-B aktivasyonunu inhibe eder ve sağlıklı yetişkinlerde proinflamatuar mediatörlerin plazma konsantrasyonlarını azaltır. J Nutr. 2007; 137 : 1951–4. [ PubMed ]
          47. Katsube N, Iwashita K, Tsuchida T, Yamaki K, Kobori M. Yabanmersini (Vaccinium myrtillus) ve antosiyaninler tarafından kanser hücrelerinde apoptoz indüksiyonu. J Tarım Gıda Kimya. 2003; 51 :68-75. [ PubMed ]
          48. Kim YS, Young MR, Bobe G, Colburn NH, Milner JA Bioactive gıda bileşenleri, inflamatuar hedefler ve kanser önleme. Kanser Önceki Araş. 2009; 2 :200–8. [ PMC ücretsiz makale ] [ PubMed ]
          49. Kolosova NG, Shcheglova TV, Sergeeva SV, Loskutova LV Uzun süreli antioksidan takviyesi, yaşlanma ile hızlandırılmış OXYS sıçanlarında oksidatif stres belirteçlerini ve bilişsel eksiklikleri azaltır. Nörobiyol Yaşlanma. 2006; 27 :1289-97. [ PubMed ]
          50. Kong J.-M, Chia L.-S, Goh N.-K, Chia T.-F, Brouillard R. Antosiyaninlerin analizi ve biyolojik aktiviteleri. Bitki kimyası. 2003; 64 :923–33. [ PubMed ]
          51. Kowalczyk C, Kxzesmski P, Kura M, Szmigiel B, Blaszczyk J. Tıpta antosiyaninler. Pol J Pharmacol. 2003; 55 :699–702. [ PubMed ]
          52. Lala G, Malik M, Zhao C, He J, Kwon Y, Giusti MM, Magnuson BA Antosiyanin açısından zengin özler, sıçanlarda kolon kanserinin çoklu biyobelirteçlerini inhibe eder. Nutr Kanser. 2006; 54 :84-93. [ PubMed ]
          53. Lazzé MC, Pizzaa R, Savio M, Stivala LA, Prosperi E, Bianchi L. Antosiyaninler, sıçan düz kasında ve hepatoma hücrelerinde tert-bütil-hidroperoksitin neden olduğu DNA hasarına karşı koruma sağlar. Mutat Arş. 2003; 535 :103–15. [ PubMed ]
          54. Lee SW Yabanmersini alımının sağlık ve antioksidan içeriğinin biyobelirteçleri üzerindeki etkileri. Yüksek Lisans Tezi. Hong Kong: Hong Kong Politeknik Üniversitesi; 2008.
          55. Lee KF, Chung WY, Benzie IF İdrar 8-okso-7,8-dihidro-2'-deoksiguanozin (8-oxodG), oksidatif stresin spesifik bir belirteci, doğrudan, izokratik LC-MS/MS kullanarak: Yöntem değerlendirmesi ve uygulaması sağlıklı yetişkinlerde biyolojik varyasyon çalışmasında. Clin Chim Acta. 2010; 411 :416–22. [ PubMed ]
          56. Lee MH, Kwon HA, Kwon DY ve diğerleri, editörler. Salmonella'ya karşı şifalı bitki özlerinin antibakteriyel aktivitesi. Int J Gıda Mikrobiol. 2006; 111 :270–5. [ PubMed ]
          57. Lee J, Lee HK, Kim CY, Choe CM, You TW, Seong GJ Saflaştırılmış yüksek doz antosiyanosit oligomer uygulaması, miyopi hastalarında gece görüşünü ve klinik semptomları iyileştirir. Br J Nutr. 2005; 93 :895–9. [ PubMed ]
          58. Libby P, Ridker PM, Maseri A. Enflamasyon ve ateroskleroz. Dolaşım. 2002; 105 :1135–43. [ PubMed ]
          59. Madhavi DL, Bomser J, Smith MA L, Singleton K. Vaccinium myrtillis (yaban mersini) meyvelerinin ve hücre kültürlerinin biyoaktif bileşenlerinin izolasyonu. Bitki Bilimi 1998; 131 :95–103.
          60. Martineau LC, Couture A, Spoor D, ve diğerleri, editörler. Kanada düşük çalı yaban mersini Vaccinium angustifolium Ait'in anti-diyabetik özellikleri. Bitkisel ilaç. 2006; 13 :612–23. [ PubMed ]
          61. Mas T, Susperregui J, Berkè B, Chéze C, Moreau S, Nuhrich A, Vercauteren J. Doğal antosiyaninlerin DNA tripleks stabilizasyon özelliği. Bitki kimyası. 2000; 53 :679-87. [ PubMed ]
          62. Matsui T, Ogunwande IA, Abesundara KJ, Matsumoto K. Doğal ürünlerin anti-hiperglisemik potansiyeli. Mini Rev Med Chem. 2006; 6 :349–56. [ PubMed ]
          63. Matsunaga N, Imai S, Inokuchi Y, Shimazawa M, Yokata S, Araki Y, Hara H. Bilberry ve ana bileşenleri, in vitro ve in vivo retina nöronal hasara karşı nöroprotektif etkilere sahiptir. Mol Nutr Gıda Arş. 2009; 53 :869-77. [ PubMed ]
          64. Matsunaga N, Tsuruma K, Shimazawa M, Yokota S, Hara H. Yabanmersini antisiyanidinlerinin anjiyogenez üzerindeki önleyici etkileri. Fitoter Araş. 2010; 24 :S42–7. [ PubMed ]
          65. Mazza G, Kay CD, Correll T, Holub BJ İnsan deneklerde yaban mersini ve serum antioksidan durumundan antosiyaninlerin absorpsiyonu. J Tarım Gıda Kimya. 2002; 50 :7731–7. [ PubMed ]
          66. McDougall GJ, Kulkarni NN, Stewart D. Berry polifenollerinin sindirim enzimleri üzerindeki inhibitör etkileri üzerine güncel gelişmeler. Biyofaktörler. 2008; 34 :73-80. [ PubMed ]
          67. Milbury PE, Graf B, Curran-Celentano JM, Blumberg JM Yabanmersini (Vaccinium myrtillus) antosiyaninleri, ARPE-19 hücrelerinde heme oksijenaz-1 ve glutatyon S-transferaz-pi ekspresyonunu modüle eder. Ophthalmol Vis Sci'ye yatırım yapın. 2007; 48 :2343–9. [ PubMed ]
          68. Mutanen M, Pajari AM, Paivarinta E, Misikangas M, Rajakangas J, Marttinen M, Oikarinen S. Önleyici diyet bileşenleri olarak meyveler-ApcMin+ fare ile mekanik bir yaklaşım. Asia Pac J Clin Nutr. 2008; 17 :123–5. [ PubMed ]
          69. Netzel FT, Strass M, Bitsch G, Bitsch I. Kırmızı şarap ve kırmızı üzüm suyu tüketimini takiben antosiyanin-3-glukozitlerin biyoyararlanımı. Can J Physiol Pharmacol. 2003; 81 :423–35. [ PubMed ]
          70. Nguyen V, Tang J, Oroudjev E, Lee CJ, Marasigan C, Wilson L, Ayoub G. Yabanmersini ekstresinin MCF7-GFP-tubulin meme kanseri hücrelerinde sitotoksik etkileri. J Med Gıda. 2010; 13 :278–85. [ PubMed ]
          71. Packer L, Cadenas E. Oksidanlar ve antioksidanlar yeniden gözden geçirildi: Yeni oksidatif stres kavramları. Serbest Radic Res. 2007; 41 :951–2. [ PubMed ]
          72. Park SJ, Shin WH, Seo JW, Kim EJ Antosiyaninler, bir murin astım modelinde hava yolu iltihabını ve aşırı duyarlılığı engeller. Gıda Kimyasal Toksikol. 2007; 45 :1459-67. [ PubMed ]
          73. Persson IA, Persson K, Andersson RG Vaccinium myrtillus ve polifenollerinin insan endotel hücrelerinde anjiyotensin dönüştürücü enzim aktivitesi üzerindeki etkisi. J Tarım Gıda Kimya. 2009; 57 :4626–9. [ PubMed ]
          74. Petlevski R, Hadžija M, Slijepčević M, Juretic D. NOD farelerinde “antidiyabet” bitkisel preparatının serum glikozu ve fruktozamin üzerindeki etkisi. J Etnofarmakol. 2001; 75 :181–4. [ PubMed ]
          75. Pool-Zobel BL, Bub A, Schràder N, Rechkemmer G. Antosiyaninler, model sistemlerde güçlü antioksidanlardır ancak kolon hücrelerinde endojen oksidatif DNA hasarını azaltmazlar. Eur J Nutr. 1999;227-34; 38 [ PubMed ]
          76. Önceki RL, Wu X. Antosiyaninler: Benzersiz metabolik modeller ve biyolojik aktivitelerle sonuçlanan yapısal özellikler. Serbest Radic Res. 2006; 40 :1014–28. [ PubMed ]
          77. Puupponen-Pimiä R, Nohynek L, Alakomi H.-L, Oksman-Caldentey K.-M. Biyoaktif meyve bileşikleri-insan patojenlerine karşı yeni araçlar. Appl Microbiol Biotechnol. 2005a; 67 :8-19. [ PubMed ]
          78. Puupponen-Pimià R, Nohynek L, Alakomi H.-L, Oksman-Caldentey K.-M. Berry fenoliklerinin insan bağırsak patojenlerine karşı etkisi. Biyofaktörler. 2005b; 23 :243–51. [ PubMed ]
          79. Qin Y, Xia M, Ma J, ve diğerleri, editörler. Antosiyanin takviyesi, dislipidemik deneklerde kolesteril ester transfer proteininin inhibisyonu ile ilişkili serum LDL- ve HDL-kolesterol konsantrasyonlarını iyileştirir. J Clin Nutr mıyım? 2009; 90 :485–92. [ PubMed ]
          80. Saija A, Princi P, D'Amico N, Pasquale R. De, Costa G. Vaccinium myrtillus antosiyaninler, sıçanda beyine triiyodotironin taşınmasında. İlaç Arş. 1990; 22 :59-60. [ PubMed ]
          81. Sakakibari H, Ogawa T, Koyanagi A, ve diğerleri, editörler. Farelerde yaban mersini antosiyaninlerinin dağılımı ve atılımı. J Tarım Gıda Kimya. 2009; 57 :7681–6. [ PubMed ]
          82. Seeram NP Berry meyveleri: Bileşimsel elementler, biyokimyasal aktiviteler ve alımlarının insan sağlığı, performansı ve hastalıkları üzerindeki etkisi. J Tarım Gıda Kimya. 2008; 56 :627–9. [ PubMed ]
          83. Kanser önleme için Seeram NP Berry meyveleri: Mevcut durum ve gelecekteki beklentiler. J Tarım Gıda Kimya. 2009; 56 :630–5. [ PubMed ]
          84. Sharma AD, Sharma R. Antosiyanin-DNA kopigmentasyon kompleksi: Oksidatif hasara karşı karşılıklı koruma. Bitki kimyası. 1999; 52 :1313–8.
          85. Shukitt-Hale B, Lau FC, Joseph JA Berry meyve takviyesi ve yaşlanan beyin. J Tarım Gıda Kimya. 2009; 56 :636–41. [ PubMed ]
          86. Song J, Li Y, Ge J, ve diğerleri, editörler. Yabanmersini (Vaccinium myrtillis L.) özlerinin kültürlenmiş insan kornea limbal epitel hücreleri (HCLEC) üzerindeki koruyucu etkileri. PhytotherRes. 2010; 24 :520–4. [ PubMed ]
          87. Stocks T, Rapp K, Bjørge T, ve diğerleri, editörler. Metabolik Sendrom ve Kanser Projesi'nde (Me-Can) kan şekeri ve olay ve ölümcül kanser riski. PLoS Med. 2009; 6 :e 1000201. [ PMC ücretsiz makale ] [ PubMed ]
          88. Svobodová A, Zdarilová A, Vostalova J. Locinere caerulea ve Vaccinium myrtillus meyve polifenolleri, HaCaT keratinositlerini UVB kaynaklı fototoksik strese ve DNA hasarına karşı korur. J Dermatol Sci. 2009; 56 :196–201. [ PubMed ]
          89. Takikawa M, Inoue S, Horio F, Tsuda T. Diyet antosiyanin bakımından zengin yaban mersini özü, diyabetik farelerde AMP ile aktive olan protein kinazın aktivasyonu yoluyla hiperglisemi ve insülin duyarlılığını iyileştirir. J Nutr. 2009; 140 :527–33. [ PubMed ]
          90. Talavera S, Felgines C, Texier O, Besson C, Gil-Izquierdo A, Lamaison JL, Remesy C. Sıçanlarda antosiyanin metabolizması ve sindirim alanı, böbrek ve beyine dağılımı. J Tarım Gıda Kimya. 2005; 53 :3902–8. [ PubMed ]
          91. Talavera S, Felgines C, Texier O, Besson C, Lamaison JL, Remesy C. Antosiyaninler, anestezi uygulanmış sıçanlarda mideden verimli bir şekilde emilir. J Nutr. 2003; 133 :4178-82. [ PubMed ]
          92. Thomasset S, Berry DP, Cai H, ve diğerleri, editörler. Kolorektal kanser kemoprevensiyonu için oral antosiyaninlerin pilot çalışması. Kanser Önceki Araş. 2009; 2 :625–33. [ PubMed ]
          93. Thomasset S, Teller N, Cai H, Marko D, Berry DP, Steward WP, ​​Gescher AJ Diyetteki antosiyaninler ve antosiyanidinler, kanser kemopreventif pigmentler, potansiyel ilaçlar olarak gelişmeyi hak ediyor mu? Kanser Kemoterapi İlaç. 2009; 64 :201–11. [ PubMed ]
          94. Tsuda T. Adiposit fonksiyonunun antosiyaninler tarafından düzenlenmesi: Metabolik sendromu önleme olasılığı. J Tarım Gıda Kimya. 2008; 56 :642–6. [ PubMed ]
          95. Tsuda T, Ueno Y, Kojo H, Yoshikawa T 3, Osawa T. Antosiyaninlerle muamele edilmiş izole edilmiş sıçan adipositlerinin gen ekspresyon profili. Biochim Biophys Acta. 2005; 1733 :137-47. [ PubMed ]
          96. Upton R, editör. Yabanmersini Meyvesi Vaccinium myrtillus L. Analiz, Kalite Kontrol ve Terapötik Standartları. Santa Cruz, CA: Amerikan Bitkisel Farmakopesi ve Terapötik Özet; 2001.
          97. Valentova K, Ulrichova J, Cvak L, Simanek V. Yabanmersini özütünün sıçan hepatositlerinin oksidatif hasarına karşı sitoprotektif etkisi. Gıda Kimyası 2006; 101 :912–7.
          98. Wang L.-S, Stoner GD Antosiyaninler ve kanser önlemedeki rolleri. Kanser Let. 2008; 269 :281-90. [ PMC ücretsiz makale ] [ PubMed ]
          99. WCRF, Dünya Kanser Araştırma Fonu/Amerikan Kanser Araştırmaları Enstitüsü. Gıda, Beslenme, Fiziksel Aktivite ve Kanserin Önlenmesi: Küresel Bir Perspektif. Washington, DC: AICR; 2007.
          100. Ulusal Sağlık Enstitüleri, ABD Ulusal Tıp Kütüphanesi. 2010. “Yaban mersini.” www .nlm.nih.gov / MedlinePlus / druginfo / doğal /patient-bilberry.html (erişilen 10 Mart 2010)
          101. Yıldırım HK Meyve şarabının renk parametreleri ve antioksidan aktivitelerinin değerlendirilmesi. Int J Gıda Bilimi Nutr. 2006; 57 :47-63. [ PubMed ]
          102. Yoshida K, Mori M, Kondo T. Antosiyaninlerle mavi renk gelişimi: Kimyasal yapıdan hücre fizyolojisine. Nat Ürün Temsilcisi 2009; 26 :884-915. [ PubMed ]
          103. Zafra-Stone S, Taharat Y, Bagchi M, Chatterjee A, Vinson JA, Bagchi D. İnsan sağlığı ve hastalıkların önlenmesinde yeni antioksidanlar olarak Berry antosiyaninleri. Mol Nutr Gıda Arş. 2007; 51 :675–83. [ PubMed ]
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6

            Yaban mersini hangi hastalıklara iyi gelir? Faydaları nelerdir?

            Yaban mersini, pek çok sağlık sorununa karşı yaygın olarak kullanılan şifalı bir bitkidir. Oldukça besleyici bir meyvedir; içeriğinde A, C, E, K vitaminlerinin yanı sıra kalsiyum, demir, potasyum ve magnezyum gibi insan sağlığı için faydalı pek çok mineral bulunur. Yaban mersini İngilizce’de blueberries olarak isimlendirilir. Ülkemizde farklı yörelerde ‘çay üzümü, turna yemişi, mavi yemiş, çoban üzümü ve kekre yemişi gibi adlar ile bilinir. Günümüzde özellikle idrar yolu enfeksiyonları ve sistit tedavisi için kullanılan yaban mersini, ayrıca çok etkili bir antioksidandır. İçindekiler
            • Yaban mersini nedir?
            • Yaban mersini ne için kullanılır?
            • Yaban mersininin faydaları
            • Yaban mersini hangi hastalıklara iyi gelir?
            • Yaban Mersini zayıflatır mı?
            • Yaban mersininin cilde faydaları
            • Yaban mersinin kalp sağlığına etkileri
            • Yaban Mersininin Zararları
            • Yaban mersin reçeli nasıl yapılır?
            Yaban mersini nedir?

            Fundagiller familyasından bir yemiş olan yaban mersinin tazesi mor-mavi arası bir renge sahip iken kurusu kara üzüme benzer, dolgun ve etli bir yemiştir. Yaban Mersini taze olarak tüketilebilen, kurutulmuş olarak çayı yapılabilen, yaprakları da kullanılabilen şifalı bir yemiştir. Yaban Mersini meyveleri Temmuzdan Eylüle kadar toplanabilir.

            Yaban mersininin üç farklı türü bulunmaktadır; bunlar, kültürü yapılan ve ekonomik öneme sahip olan yüksek boylu ‘Vaccinium corymbosum’, alçak boylu ‘Vaccinium darrowii’ ve tavşan gözü yabanmersini olarak bilinen ‘Vaccinium ashei Reade’dir. Yaban Mersininin içerdiği besinler ve vitaminler nelerdir?

            • 84 Kalori, 21.4 gram karbonhidrat, 1.1 gram protein, 0.5 gram yağ
            • 3.6 gram diyet lifi, 28.6 mikrogram K vitamini
            • 0.5 miligram manganez, 0.1 miligram bakır
            • 14.4 mg C vitamini, 0.1 miligram B6 vitamini, 0.1 miligram tiamin
            • 0.1 miligram, riboflavin, 0.8 miligram E vitamini
            Yaban mersini ne için kullanılır?

            Yaban mersini türlerinden mavi yemiş, antioksidan içeriği en yüksek meyvedir. Gece körlüğü, gözlerde kamaşma, görme bozuklukları gibi sağlık sorunlarına karşı kullanılır. ABD ve Avrupa’da özellikle idrar yolu enfeksiyonları ve sistit tedavisinde doktorlar tarafından tavsiye edilen yaban mersini, kan şekeri ve kolesterolü düşürür. Ayrıca, ağız içi yaraları iyileştirir, damar sertliğini azaltır, kalp krizi riskini azaltır, yaşlanmayı yavaşlatır ve hafıza kayıplarını önler. Kalori miktarı az olan bu şifalı bitki ayrıca ishali, ülseri, kabızlığı ve mide bulantısını da önlemektedir.
            Yaban mersininin faydaları

            Yaban Mersini görüntü olarak küçük olsa da faydaları açısından boyutlarını aşmaktadır. Bir avucu bile dünyada en besleyici meyveler arasındadır. Yaban mersini hem besleyicidir hem de zengin bir antioksidan kaynağıdır. Bu durumu onun öncelikle bağışıklık sistemi, kalp ve beyin gelişimi için önemli meyveler arasında yer almasına neden olur. Yaban mersini hangi hastalıklara iyi gelir?

            Yaban Mersini üzerinde yapılmış araştırmalar, onun bazı kanser türlerine karşı önleyici etkisi olduğunu ortaya çıkarmıştır. Örneğin Yaban Mersini özünün, meme kanseri hücresinin büyümesini ve yayılmasını yavaşlattığı saptanmıştır. Louisville Unversity Brown Kanser Merkezi’nde yapılan bir çalışmada Yaban Mersini tozu kullanılarak meme kanserli farelere tedavide tümör hacmini %40 azalttığı bulunmuştur. Yaban Mersini zayıflatır mı?

            Yaban Mersini hızlı kilo vermek ve kilo kontrolü sağlamak açısından birincil yardımcılardan biridir. Hızlı kilo vermenizin yanı sıra, bir porsiyon Yaban Mersini ile günlük lif ihtiyacınızın %14’ünü karşılayabilirsiniz. Lif tüketimi sindirim sisteminde yavaş hareket ettiğinden açlık hissinizi ve ihtiyacınızı bastıracaktır. Çeşitli hayvanlar üzerinde yapılan deneyler kilo kaybı sağlayan Yaban Mersini etkilerini doğrulamıştır. Ancak kilo kaybında kesin ve doğru sonuçlar için çok yönlü ve besleyici bir diyet programı ile birlikte fiziksel aktivitenin önemi de yadsınmamalıdır. Bu nedenle kullanmadan önce bir diyetisyene danışabilirsiniz. Yaban mersininin cilde faydaları

            Yaban mersini cildinizin yağ seviyesini düzenler. Bu, daha sağlıklı cilde sahip olma konusunda önemli bir rol oynar. Etkili bir cilt bakım maskesi denemek isterseniz, yarım su bardağı Yaban Mersinini bir çorba kaşığı zeytinyağı ve balla pürüzsüz olana kadar karıştırın. 20 dakika boyunca uygulayın ve ılık su ile yıkayın. Cilt kuruluğu ve akneye karşı için cildinize gereken nemi sağlayacaktır.

            Ayrıca Aloe vera jel ile Yaban Mersini karışımını çökkün göz altlarınıza uygulayabilir, göz altı morluklarının tedavisinde kullanabilirsiniz. Ancak içeriğinde bulunan maddelerden herhangi birine karşı hassasiyetiniz var ise, mutlaka doktorunuza danışınız. Yaban mersininin idrar yolu enfeksiyonu ve sistit tedavisine etkisi

            Yaban mersini, idrar yolu enfeksiyonu tedavisinde yardımcıdır. Çoğu idrar yolu enfeksiyonuna E. Coli olarak bilinen bir bakterinin neden olduğu bilinmektedir. Bu bakteri idrar yoluna yapışmakta ve bu nedenle de idrarla atılamamaktadır. Yaban Mersini meyvesinin doğal antibiyotik özelliği vardır ve bu özelliği ile idrar yolunu bu bakteriden temizleyebilir. Ayrıca sistit olmuş kadınların yaban mersini tüketmelerinin çok faydalı olduğu pek çok bilimsel çalışma ile kanıtlanmıştır. Yaban Mersini iltihapları yatıştırır. Yaban Mersini üzerinde yapılmış çalışmalar hastalık ve hafif yaralanmalarda vücudun kendini çabuk toparlamasına yardımcı olduğu yolundadır. Bunun dışında kronik inflamasyon, kanser, otoimmün koşulları, kalp hastalığı hatta depresyon da dahil olmak üzere geniş yelpazedeki hastalıkların tedavisinde katkı sağladığı düşünülmektedir. Yaban mersinin kalp sağlığına etkileri

            Yaban Mersini, kanın pıhtılaşmasını önleyerek damar tıkanıklığa karşı etkin bir rol üstlenir ve kalp sağlığını korumaya yardımcı olur. Kalp, gelişmek ve hayatta kalmak için gerekli oksijen ve besin ile dokuları sağlamak için vücuda kan pompalamaktan sorumludur. Bugün yüksek trigliserit, yüksek kolesterol ve yüksek kan basıncı kalbin üzerinde baskı oluşturan, kalbi yoran birkaç risk faktörüdür.

            Yaban mersini meyveleri

            Yaban Mersini üzerinde yapılmış çeşitli araştırmalar, bu meyveyi tüketiminin kalp hastalıkları üzerinde etki sahibi olduğunu ve vücudun normal değerlerde seyretmesine yardımcı olduğunu ortaya koymuştur. Yaban mersininin diğer şifalı faydaları nelerdir?

            • Yaban Mersini beyin sağlığı ve özellikle hafıza ile algılama bakımından yararlıdır. Bu konuda da oldukça fazla çalışma mevcuttur. Beyin gelişimi ve hafıza açısından sayılabilecek diğer önemli besinler arasında avokado, pancar, yeşil yapraklı sebzeler ve ceviz ek olarak sayılabilir.
            • Yaban mersini, kan damarlarının güçlenmesine yardımcı olan yüksek C vitamini içeriğine sahiptir, böylece cilt yüzeyinin altında kılcal damarları onarır.
            • Yaban Mersini yüksek antioksidan özelliği sayesinde, cildin yenilenmesine ve geç yaşlanma belirtileri göstermesine yardımcı olur.
            • Yaban Mersini sindirim sisteminin düzenli çalışmasına fayda sağlar, çok lifli bir şifalı bitki olduğu için kabızlığı önlemede çok faydalıdır.
            • Şeker hastalığının tedavisinde faydalı olduğu araştırmalar ile kanıtlanmıştır
            • Yaban Mersini ile ilgili çalışmalar beslenme yararı bakımından obeziteye bağlı koşulları nötralize ettiğini ortaya çıkarmıştır.
            • Yaban Mersininin anti-enflamatuar etkisi yüksek tansiyon ve obezite ilgili metabolik bozuklukların gelişmesini önlemektedir.
            • Yaban Mersini ağız sağlığı için oldukça faydalıdır. Yaban Mersini ağız içinde oluşan enflamasyon durumunda yaranın iyileşmesinde yarar sağlar.
            • Göz sağlığı ve görme bozukluğu olanlar için fayda sağlar. Taze meyve olarak da, maske olarak da kullanılabilmektedir.
            Yaban Mersininin Zararları

            Yaban Mersininin bilinen bir yan etkisi yoktur, hem yaprakları hem de gövdesi güvenle kullanılabilmektedir. Ancak yine de her besinin aşırı tüketiminin çeşitli yan etkilere yol açabileceği endişesini taşımak gerekir çünkü yaprakları tanen denen bir madde içerir.

            Siyah çaylarda da bulunan tanen isimli bu madde aşırı tüketildiğinde hızlı kilo kaybına, kalp spazmına neden olabilir. Diğer yandan kullanan kişinin düzenli kullandığı ilaçlar var ise Yaban Mersini bu ilaçların etkisini azaltabilir. Bu nedenle herhangi bir ilaç kullanımı ile birlikte Yaban Mersinini birlikte kullanmadan önce mutlaka doktora danışmak gerekir. Aşırı kullanımla birlikte ortaya çıkabilecek herhangi bir yan etki durumunda mutlaka doktora danışınız.
            • Kan pıhtılaşasını önleyen Yaban Mersininin kadınlarda adet döneminde kullanılması fazla kanamaya sebep olabilir. Bu nedenle adet dönemi ve öncesinde tüketilmemelidir. Herhangi bir yaralanma veya ameliyat öncesinde kanamayı arttıracağından kullanılmaması gereklidir.
            • Yaban Mersini, lif kaynağı olması ile bağırsakları çalıştırma, kabızlığı tedavi etme ve sindirimi sağlıklı tutma gibi yararlar sağlarken, fazla kullanımında yani fazla lif alımında oluşabilecek gaz, şişkinlik, ishal vb. sorunlara neden olabilir. Bu kullanıma bağlı olarak oluşabilecek etkilerden kaçınmak için önceden mutlaka uzman bir hekime danışılması gerekmektedir. Kadınlarda günlük lif ihtiyacı 25 gram, erkeklerde ise 38 gramdır. Bir su bardağı Yaban Mersini ise 3.7 gramdır.
            • Yaban mersininin kanı sulandırıcı bir etkisi vardır, bu nedeniyle ameliyat öncesinde yahut regl dönemindeki kadınların tüketmemesi gereken besinler arasındadır. Ayrıca içinde salisitat maddesi bulunmaktadır, bu nedenle salisilat maddesine duyarlı kişilerde çeşitli yan etkilere sebep olabilir. Bu durumda hassasiyeti olanlarda yaban mersini yedikten sonra mide bulantısı, kusma, reflü, şişkinlik, gaz, baş ağrısı gibi bazı sorunlar görülebilmektedir.
            • Hamilelik döneminde tüketilmesinde herhangi bir olumsuz sonuca yol açmamış olmasına rağmen yine de bu dönemde aşırı tüketiminden kaçınılmalıdır.
            • Yaban mersininin kan şekerini düşürücü etkisi bulunmaktadır. Bu sebepten dolayı ilaç kullanması gereken şeker hastalarının bu meyveyi veya türevlerini tüketmeden önce doktorlarına danışarak hareket etmeleri önemlidir.
            Yaban mersin reçeli nasıl yapılır?

            Yaban mersini son yıllarda kolaylıkla ulaşılabilen faydalı bir orman meyvesidir ve pek çok şekilde tüketilebilmektedir. Kurusu çerez gibi yenebildiği gibi reçeli yapılarak kahvaltılarda keyifle tüketilebilir. Öncelikle reçelini yapacağınız Yaban Mersininin sahte olmamasına dikkat etmeniz gerekir. Yaban mersin reçelini yapmak çok kolaydır. Öncelikle bunun için 4 su bardağı yaban mersini ve 2-3 su bardağı toz şeker gerekir. Eğer taze yaban mersininden reçel yapmak istiyor iseniz önce temizleyip yıkamanız gerekir. Dondurulmuş üründen yapacaksanız ılık suyla çözdükten sonra reçel işlemine başlayın. Hazır olduğunda yaban mersinlerini uygun büyüklükte bir tencereye koyarak üzerine belirtilen ölçekte şeker ilave edin ve orta yoğunluktaki ateşte kaynatmaya başlayın. Tam kaynamaya başladığında kısmen köpürecektir, ara ara bunu temizlemeniz gerekecektir. Kaynamaya başladıktan yaklaşık bir saat sonra kıvam almaya başlayan reçelinizi indirerek dinlendirdikten sonra kavanozlayıp afiyetle tüketebilirsiniz.
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7

              Resveratrol ve pterostilbenin yaşlanma ve uzun ömür üzerindeki etkisi

              Yi Rong Li1 2, Şimşek Li3, Chi-Chien Lin2 4 5
              Bağlantılar genişletmekSoyut

              Geçtiğimiz yıllarda yapılan çeşitli araştırmalar, polifenoller açısından zengin gıdaların ateroskleroz, kardiyovasküler hastalık, kanser, artrit, katarakt, osteoporoz, tip 2 diyabet (T2D), hipertansiyon ve Alzheimer hastalığı gibi yaşa bağlı hastalıklara karşı koruduğunu bulmuştur. Üzüm ve yaban mersini içinde bulunan polifenol olan resveratrol ve pterostilben, oksidatif hasar, iltihaplanma, telomer yıpranması ve hücre yaşlanması dahil olmak üzere yaşlanmanın ayırt edici özelliklerini modüle ederek yaşlanma karşıtı bileşikler olarak faydalı etkilere sahiptir. Bu derlemede, resveratrol ve pterostilben ile oksidatif stres, inflamasyon ve yüksek kalorili diyetler dahil olmak üzere olası yaşlanma biyobelirteçleri arasındaki ilişkiyi tartışıyoruz. Ayrıca resveratrol ve pterostilbenin yaşam süresi, yaşlılığa bağlı hastalıklar ve sağlığın korunması üzerindeki olumlu etkisini de tartışıyoruz. Ayrıca, muhtemelen yaşa bağlı bozuklukların hafifletilmesinde rol oynayan resveratrol ve pterostilben tarafından modüle edilen çeşitli önemli mekanizmaları özetliyoruz. Genel olarak, yaşa bağlı mekanizmaları modüle ederek yaşa bağlı çeşitli hastalıkların önlenmesi veya tedavisi için resveratrol ve pterostilben potansiyelini tanımlıyoruz. © 2017 BioFactors, 44(1):69-82, 2018.

              Anahtar Kelimeler: yaşlanma; sağlık süresi; ömür; pterostilben; resveratrol.

              © 2017 Uluslararası Biyokimya ve Moleküler Biyoloji Birliği.
              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap


              • #8

                12 Haftalık Yabanmersini Ekstresi ( Vaccinium myrtillus L.) Alımı, Gözdeki Siliyer Kas Kasılmasına İlişkin İyileştirilmiş Objektif Bulgular: Randomize, Çift Kör, Plasebo Kontrollü, Paralel Grup Karşılaştırma Denemesi

                Marie Kosehira , 1, * Naomichi Machida , 1, * ve Nobuyoshi Kitaichi 2
                Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi İlişkili Veriler
                1 Araştırma Departmanı, Omnica Co., Ltd, 4-21-7 Itabashi, Itabashi Ward, Tokyo 173-0004, Japonya
                2 Hokkaido Sağlık Bilimleri Üniversitesi Oftalmoloji Bölümü, Sapporo 002-8072, Japonya; pj.ca.u-oyri-ukoh@atikubon
                * Yazışma: pj.oc.acinmo@arihesok (MK); pj.oc.acinmo@adihcam (NM); Tel.: +81-3-5944-4201 (MK & NM); Faks: +81-3-5944-4211(MK & NM)
                Tamamlayıcı Malzemeler
                Git: Soyut

                12 haftalık randomize, çift kör, plasebo kontrollü, paralel grup karşılaştırmalı bir çalışma, uzun süreli standardize edilmiş yabanmersini özü (SBE) alımının, görsel ekran terminalinin neden olduğu siliyer kasın tonik yerleşimi üzerindeki etkilerini belirlemek için yürütülmüştür. VDT) görevleri. Bu çalışma CONSORT 2010 beyannamesine uygundur. 20-60 yaş arası toplam 109 sağlıklı yetişkin erkek ve kadın alındı ​​ve SBE ve plasebo gruplarına randomize edildi. SBE ve plasebo gruplarındaki deneklere 12 hafta boyunca günde bir kez sırasıyla 240 mg SBE ve plasebo uygulandı. Testler, 0, 4, 8 ve 12. haftalarda VDT görevlerinden önce ve sonra yapıldı; yüksek frekanslı bileşen (HFC)-1 değeri değerlendirme sonucuydu.p = 0.014 ve 0.017, sırasıyla). Bu çalışma, 12 hafta boyunca 240 mg SBE ekstraktının oral tüketiminin, VDT görevlerinin ve yakın görüş görevlerinin neden olduğu siliyer kasın tonik akomodasyonunu rahatlattığını göstermektedir.

                Anahtar Kelimeler: yaban mersini, astenopi, klinik çalışma, akomodasyon, refraksiyon, akomodatif mikro dalgalanma
                Git: 1. Giriş

                Görsel ekran terminali (VDT) cihazlarının artan dağılımı nedeniyle, gözlerimiz sürekli olarak fazla çalışıyor [ 1 , 2 ]. Sağlık, Çalışma ve Refah Bakanlığı tarafından yürütülen ankete göre, VDT görevlerini yerine getiren işçilerin oranı artıyor; 2008 anketine göre, tüm çalışanların yaklaşık %50'sinin günde ≥4 saat VDT görevleriyle meşgul olduğu bulundu. Fiziksel yorgunluk ve VDT işle ilgili semptomlar yaşayan işçilerin %91,6'sı "oküler yorgunluk ve oküler ağrı" yaşıyor, bu da gözlerde yüksek bir VDT görevi yükü olduğunu gösteriyor [ 1]. Son zamanlarda akıllı telefon ve tablet gibi VDT cihazlarının göze yakın kullanıldığında ve yerleştirildiğinde kullanımı insanlar arasında hızla yaygınlaşıyor. Bireysel akıllı telefon sahipliği 2011'de %14,6'dan 2016'da %56,8'e dört katına çıktı ve akıllı telefon kullanıcılarının ≥%90'ı 40 yaşında veya daha genç [3 ] . Bireyler kişisel bilgisayar ve akıllı telefon gibi VDT cihazlarını uzun süre gözlerinin yakınında kullandıklarından, göz kasları yorulur ve gerginlik yaşar, bu da odak ayarını zorlaştırır. Ayrıca, giderek daha fazla genç insan presbiyopiye benzer semptomlar yaşamaya başladığından, VDT kullanıcılarının yaşam kalitesini iyileştirmek için oküler yorgunluğu önlemek ve azaltmak son derece önemlidir.

                Yaban mersini ( Vaccinium myrtillus L.), beş tip aglikon (siyanidin, delfinidin, malvidin, peonidin ve petunidin) ve üç tip monosakkaridin (glikoz, galaktoz ve arabinoz) kombinasyonundan oluşan 15 tip düşük moleküler antosiyanin glikozit içerir. ). Bu 15 V. myrtillus antosiyaninleri (VMA'lar), yaban mersininin ana bileşenleri olarak işlev görür. Bu 15 VMA'nın ayrılması ve arıtılması yoluyla elde edilen yaban mersini özü, gıdanın "üçüncül" işlevinin olduğu fonksiyonel gıdaların bir bileşeni olarak kullanılmıştır [ 4] sadece yaban mersini tüketmek yerine kasıtlı olarak düzenlenir. Farklı ekstraksiyon yöntemleri, farklı genel bileşimlere sahip yaban mersini özleri verir; Yaban mersini özleri aynı VMA'ları paylaşsa bile faydaları ve güvenlikleri değişebilir [ 5 , 6 ]. Mevcut yazıda, birkaç testte [ 7 , 8 , 9 , 10 ] tekrarlanabilirliği onaylanmış yaban mersini özünden standart yabanmersini özü (SBE) olarak söz ediyoruz.

                SBE tüketiminin, VDT görevlerinin neden olduğu yakınsama, miyoz ve reddedilen akomodasyon işlevini baskıladığını veya rahatlattığını doğruladık [ 7 , 8 , 9 , 10 ]. Ayrıca, VDT görevlerinin neden olduğu siliyer kasın tonik akomodasyonu için müdahale koşulları oluşturduk ve SBE'nin minimum etkili dozunu [ 8 ] ve etkinlik ifadesi için minimum süreyi [ 9 ] doğruladık. SBE tüketimini inceleyen bu 12 haftalık randomize, çift kör, plasebo kontrollü, paralel grup karşılaştırma çalışması, uzun süreli SBE tüketiminin VDT ​​görevlerinin neden olduğu siliyer kasların tonik yerleşimi üzerindeki etkilerini ve güvenliğini belirlemeyi amaçladı.

                Bu, CONSORT 2010 beyanına göre ( Şekil S1, Tablo S1 ) Yabanmersini özütünün etkinliği için yapılan ilk denemedir.

                Git: 2. Yöntemler ve Konular
                2.1. Deneme Tasarımı ve Konuları


                SBE tüketiminin oküler yorgunluk semptomları üzerindeki etkisini değerlendirmek için randomize, çift kör, plasebo kontrollü, paralel grup insan klinik çalışması yürüttük. Deneme, Helsinki Bildirgesi'nin ilkelerine ve İnsan Deneklerini İçeren Tıbbi ve Sağlık Araştırmaları için Etik İlkelere sıkı sıkıya bağlı kaldı ve deneme planı Huma R&D etik inceleme kurulu tarafından onaylandı (onay tarihi 15 Ocak 2016). Bu çalışma https://www.umin.ac.jp/ctr/index.htm adresinde kayıtlıdır.(UMIN kayıt numarası: UMIN000020866). Araştırmaya katılmadan önce tüm deneklere yeterli açıklama yapıldı ve yazılı bilgilendirilmiş onam alındı. Oküler yorgunluk testi Medicine Evaluation Research Center tarafından, güvenlik testi ise K Medical Office TOC Building Clinic tarafından yapıldı.

                20-60 yaşları arasındaki toplam 109 sağlıklı yetişkin erkek ve kadın, İnsan Ar-Ge halkının deneme katılımı talebine yanıt verdi. İşleri VDT görevlerini içeren ve subjektif oküler yorgunluk semptomları olan denekler seçildi. Yargılama öncesi tarama sırasında görüşmeler, vücut ölçümleri, kan testleri, idrar testleri ve oküler yorgunluk testleri yapıldı ve ön anketler uygulandı. Aşağıdaki kriterlerden herhangi birini karşılayan denekler araştırmadan çıkarıldı:
                1. Sindirim sistemi, karaciğer, pankreas, kalp veya böbrek ile ilgili ciddi hastalıklar veya böyle bir hastalık öyküsü
                2. şu anda ilaçlarla tedavi altında
                3. ametropi dışındaki oküler hastalıklar (hipermetropi, miyopi veya astigmatizm)
                4. mevcut ilaç ve gıda alerjileri
                5. Uyuşturucu bağımlılığı ve madde kötüye kullanımı öyküsü veya tedavisi altında
                6. gece vardiyası veya düzensiz çalışma saatleri
                7. refraktif cerrahi öyküsü; LASIK (lazer destekli in situ keratomileusis) veya diğerleri
                8. okuma gözlüğü kullananlar
                9. oküler yorgunluğu artırabilecek BE, ilaçlar veya takviyelerin mevcut tüketimi
                10. son 1 ay içinde başka bir klinik araştırmaya katıldı
                11. hamile, emziren veya deneme süresi boyunca hamilelik planlaması
                12. Son 1 ay içinde ≥ 200 mL kan örneği alma ve
                13. araştırma sorumlusu veya araştırmaya katılan doktor tarafından okunaksız kabul edildi

                Deneme öncesi tarama sırasında deneklerin baskın gözleri kartta delik yöntemi kullanılarak belirlendi. Denekler, müdahale deneyinde yer almayan personel tarafından SBE ve plasebo gruplarına randomize edildi; cinsiyet ve yaş gruplar arasında dengelendi. Personel, test edilen gıdaların kimliğini sembollerle maskeleyerek denekleri kör etti ve test edilen gıdalar aynı personel tarafından güvenli bir şekilde yönetildi.

                SBE tüketimi [ 8 ] ile ilgili önceki denemelerimize göre uyumlu mikro dalgalanmanın yüksek frekanslı bileşeni (HFC) ölçüldü. HFC'nin güç spektrumunu, hızlı Fourier dönüşümü [ 11 ] kullanılarak ölçülen değerlere dayalı olarak hesapladık . Anlamlılık düzeyi <%5 olarak ayarlandı. Bu koşul altında, istatistiksel gücü 0.8 veya 0.9 olarak ayarlamak için gereken denek sayısı sırasıyla 88 veya 117 idi. Hedef vaka sayısı 120 olarak, denekler deneme süresi boyunca bıraksalar bile istatistiksel güç ≥0,8 olacak şekilde seçildi. 2.2. Deney Gıdaları

                SBE grubuna, önceki raporlarda kullanılanla aynı SBE olan 240 mg SBE (Omnica Co., Ltd, Tokyo, Japonya) içeren sert bir kapsül uygulandı [ 7 , 8 , 9 , 10 ]. Plasebo grubuna SBE içermeyen bir kontrol kapsülü uygulandı.tablo 1test edilen gıdaların bileşimini gösterir. SBE'deki VMA konsantrasyonu, antosiyanin referansı olarak siyanidin 3-glukozit klorür ile HPLC kullanılarak belirlendiğinde %36.89 ve referans malzemenin mutlak saflığını kullanan bir kantitatif yöntem kullanılarak belirlendiğinde %35.82 idi. Mutlak saflık referans malzemesi dönüştürülerek ölçülen SBE'deki siyanidin 3-glukozit klorürün gerçek değeri %3,83 ve toplam 15 VMA'nın gerçek konsantrasyonu %29,00 idi. SBE gıdasından ayırt etmek için plasebo gıdaya yaklaşık 68.0 mg karamel rengi eklendi. tablo 1


                Standartlaştırılmış yaban mersini özü (SBE) ve plasebo gıdaların (mg/gün) bileşimi.
                * 240.0 0
                Dekstrin 27.2 51.0
                Nişasta 45.6 193.8
                Kalsiyum stearat 22.1 22.1
                Silikon dioksit (ince) 5.1 5.1
                karamel rengi 0 68
                Ayrı bir pencerede aç
                * Fonksiyonel bileşenler: %36,89 toplam antosiyanin. 2.3. Tüketim Yöntemleri ve Takvimi


                Denekler, günlük rutinlerini değiştirmeden 12 hafta boyunca günde bir kez SBE veya plasebo yiyecek tüketti. SBE ve plasebo gıdalar, kahvaltı veya öğle yemeğinden önce aç karnına tüketilecekti.

                Şekil 10, 4, 8 ve 12. haftalarda VDT görevlerinden önce ve sonra gerçekleştirilen testlerin akışını gösterir. Her denek, deneme yerine vardıklarında bir göz maskesi taktı, 10 dakika dinlendi ve ardından akomodatif mikro dalgalanmanın HFC'sini ölçtü. VDT yüklemeden önce. Ölçümler, baskın olan gözün ardından baskın olmayan göze göre yapıldı.
                İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-12-00600-g001.jpg'dir.
                Şekil 1
                Test programı.

                Yük testinden önce denekler, 500 ± 50 lüks aydınlatmaya sahip bir odada 40 dakika boyunca VDT görevlerini gerçekleştirdiler. Yükleme görevi aşağıdaki gibiydi. Bir akıllı telefona (Apple Inc. iPhone 5) bir ip bağlandı ve bu ip deneklerin boyunlarına ekran ve deneklerin gözleri arasında 30 cm mesafe olacak şekilde bağlandı. Denekler, hepsinde benzer bir VDT yükü olacak şekilde bu pozisyonda bir oyun oynadı. Oyun, düşen molozları toplamanın basit bir oyunuydu: Tetris®. Yük sonrası test olarak, VDT görevinin bitiminden 1 dakika sonra HFC ölçülmüştür. 2.4. Test Öğeleri


                Oküler testler (HFC ölçümleri), müdahalenin ilk günü olan 0. haftada (0w), 4. haftada (4w), 8. haftada (8w) ve 12. haftada (12w) yapıldı. Klinik günlük günlük olarak kontrol edildi (test edilen gıdanın tüketimi, sağlık durumu, yan etkiler vb.). Güvenlik testi, tarama (SCR) sırasında ve 12. haftada (Tablo 2). Tablo 2


                Test edilmiş gıdalar ve test programı.
                Oftalmik muayene (HFC) ● ● ● ● ●
                antropometrik ● ●
                doktorun soruları ● ●
                Kan testi/İdrar testi ● ●
                Günlük
                Ayrı bir pencerede aç
                Test noktaları: ●, Günlük giriş süresi: . 2.4.1. Oküler Yorgunluk Testi

                Otorefraktör/keratometre ARK-560A'ya (NIDEK) yüklenen oküler akomodasyon fonksiyon analiz yazılımı AA-2 (NIDEK, Nagoya, Japonya) kullanılarak, Kajita ve arkadaşlarının raporuna göre HFC incelenmiştir. [ 12]. Kısaca, her ölçüm için hesaplanan minimum kırılmaya bağlı olarak hedefin konumu 0,5 diyoptri aralığında uzaktan yakına +0,5 ile -3,0D arasında değiştirilerek akomodasyon yanıt dalga formu 8 kez ölçüldü. Sınava girenlere her adımda hedefe net bir şekilde bakmaları talimatı verildi. Elde edilen dalga formlarının hızlı Fourier dönüşümü ile elde edilen frekans spektrumları, logaritmaya dönüştürüldü ve bu, HFC'yi elde etmek için 1.0–2.3 Hz frekans ile entegre edildi. Minimum kırılmadan -0.75D'ye kadar olan kısım HFC-1 aralığı olarak tanımlandı ve HFC-1 aralığındaki ortalama HFC, HFC-1 değeri olarak tanımlandı. İnsan gözleri durağan bir hedefe sabitlendiğinde, sübjektif olarak, kırılma durağan gibi görünür; ancak gerçekte siliyer kas tekrar tekrar kasılır ve gevşer, kırılmada sinüzoidal bir dalgalanmaya yol açar. Bu dalgalanma akomodatif mikro dalgalanma olarak adlandırılır ve düşük frekanslı bileşenlere (<0,6 Hz'lik kademeli dalgalanmalar) ve yüksek frekanslı bileşenlere (1,0–2,3 Hz'lik nispeten hızlı dalgalanmalar) ayrılır. Düşük frekanslı bileşenler, odak noktasını ayarlayan akomodasyon tarafından üretilirken, yüksek frekanslı bileşenler, siliyer kasın aktivitesini yansıtan merceğin kırılma gücündeki dalgalanmalardan kaynaklanır.11 , 13 , 14 ]. 2.4.2. Güvenlik Değerlendirmesi

                Güvenlik değerlendirmesi için, denemenin başlamasından önce ve sonra kan testleri, idrar testleri, vücut ölçümleri ve görüşmeler yapıldı. Bu denemede test edilen gıdaların tüketimi sırasında ortaya çıkan tüm istenmeyen veya kasıtsız belirtiler, semptomlar ve hastalıklar, test edilen gıda ile nedensel ilişkiye bakılmaksızın olumsuz olaylar olarak kabul edildi. 2.5. İstatistiksel İşleme

                Gruplar arasında HFC-1 değerlerini karşılaştırmak için kovaryans analizi (ANCOVA) kullanıldı. %10'un altındaki değerler önemli bir eğilim olarak kabul edildi ve iki kuyruklu testlerde bu değerlerin < %5'i önemli bir fark olarak kabul edildi.

                Veriler, SAS 9.3 (SAS Institute, Inc, Cary, NC, ABD) ve Microsoft Excel 2013 (Microsoft Corp.) kullanılarak analiz edildi.

                Git: 3. Sonuçlar
                3.1. Konu Arka Planı


                Denekler 18 Ocak - 29 Şubat 2016 arasında toplandı ve deneme 11 Nisan - 21 Temmuz 2016 arasında yürütüldü. Kan ve idrar testleri ve bir anket kullanılarak deneme öncesi birincil taramaya tabi tutulan 206 denekten 175'i seçildi İkincil taramaya geçmek için. Bu 175 deneğin 14'ü kişisel nedenlerle çalışmadan reddedildi ve 161'ine ikincil tarama olarak HFC-1 ölçümü yapıldı; bu 161 kişiden 120'sinin sonuçlarına göre uygun olduğu belirlendi.

                120 uygun denekten 38'i erkek ve 82'si kadındı; deneklerin ortalama yaşı 35.16 ± 7.38 idi. Deneme başlamadan önce, 11 denek kişisel nedenlerle çekildi ve geri kalan 109 denek (SBE grubunda 55 ve plasebo grubunda 54) öngörülen programı ve denemeyi tamamladı.Tablo 3109 öznenin arka plan bilgilerini sunar. HFC-1 analizi için, 109 kişiden 97'si, testi yapanın sağladığı talimatlara göre denemeyi tamamlayabildi. Deneklerin yaş dağılımı, plasebo grubunda 20'li yaşlarda 10, 30'lu yaşlarda 18 ve 40'lı yaşlarda 20 kişi ve plasebo grubunda 20'li yaşlarda 10, 30'lu yaşlarda 14 ve 40'lı yaşlarda 25 kişi şeklindeydi. SBE grubu. Bu nedenle her iki grubun yaş dağılımı benzer olup, yaşam tarzları açısından fark yoktu.şekil 2deneklerin kaydedilmesinden verilerin analizine kadar olan akışı sunar.
                İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-12-00600-g002.jpg'dir.
                şekil 2
                Çalışmanın akış şeması ( n = toplam denek). Tablo 3


                Deneklerin geçmiş bilgileri.
                Cinsiyet (erkek/kız) ( n ) 54 (16/38) 55 (18/37)
                Yaşam yılları) 35,46 ± 6,96 36,18 ± 7,14
                Yükseklik (cm) 163,72 ± 8,03 163,11 ± 8,71
                Vücut ağırlığı (kg) 56,78 ± 8,71 57,77 ± 10,65
                Vücut kitle indeksi (kg/m 2) 21,06 ± 2,3 21,58 ± 3,13
                Ayrı bir pencerede aç 3.2. HFC-1 Değerlerine Göre Oküler Yorgunluk Üzerindeki Etki


                Yükleme öncesi ve yükleme sonrası HFC-1 değerleri (ΔHFC-1) arasındaki farka gelince, 0. haftadaki varyasyon (SBE'ye karşı plasebo, 1,135'e karşı 0,123) kovaryant olduğunda, SBE grubu önemli ölçüde daha düşük değerler gösterdi. plasebo grubu (Tablo 4VeFigür 3B) 4. haftada (SBE'ye karşı plasebo, 0.478'e karşı 1.296, p = 0.018) ve 12. haftada (SBE'ye karşı plasebo, 0.053'e karşı 0.347, p = 0.049).
                İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-12-00600-g003.jpg'dir.
                Figür 3
                Değer 0, 4, 8 ve 12. haftalarda değişir. HFC-1 değerlerinde değişiklikler. İstatistiksel anlamlılık: * plasebo grubuna karşı p < 0.05. Tablo 4


                HFC-1 değerleri.
                0w VDT yüklemesinden önce 50.60 ± 4.13 51.08 ± 3.84
                VDT yüklemesi sonrası 50.72 ± 4.28 52.21 ± 4.16
                4w VDT yüklemesinden önce 49.51 ± 4.13 50.90 ± 5.04
                VDT yüklemesi sonrası 50.81 ± 4.92 51.37 ± 4.29 0,225
                8w VDT yüklemesinden önce 50.94 ± 4.93 50.08 ± 4.68
                VDT yüklemesi sonrası 51.13 ± 5.19 50.64 ± 4.70 * 0.014
                12w VDT yüklemesinden önce 50.32 ± 4.33 50.59 ± 4.20
                VDT yüklemesi sonrası 50.67 ± 5.13 50.65 ± 4.03 * 0.017
                Ayrı bir pencerede aç
                Değerler ortalama ± standart sapmalar olarak gösterilmiştir; VDT'den önce HFC-1'i yükleyin ve VDT'den sonra HFC-1'i yükleyin. İstatistiksel anlamlılık: * plasebo grubuna karşı p < 0.05. VDT: görsel ekran terminali. 3.3. Emniyet


                Deneme süresi boyunca advers olay insidansları, deneklerin ( n = 109) günlüklerine ve doktorlar tarafından yapılan görüşmelere dayalı olarak araştırılmıştır. Aynı denekte aynı advers olayın birden çok kez görülmesi tek bir vaka olarak kabul edildi (Tablo 5). Meydana gelen tüm yan etkilerin test edilen gıdalarla ilgisi olmadığı doktorlar tarafından belirlendi. Ayrıca doktorlar, test edilen gıda tüketimi ile ilgili genel kan, kan biyokimyası ve idrar testlerinde herhangi bir değişiklik olmadığını belirlediler. Tablo 5


                Standartlaştırılmış yaban mersini özü (SBE) ve plasebo gruplarındaki olumsuz olaylar.
                Nezle, soğuk algınlığı 12 10
                baş ağrısı 11 18
                Sindirim semptomları (mide ağrısı veya ishal) 6 6
                Adet sancısı 3 4
                Diğer 17 24
                Ayrı bir pencerede aç
                Git: 4. Tartışma

                Bu çalışmada indeks olarak VDT yükünün neden olduğu siliyer kas kontraksiyonu ile oküler yorgunluğun baskılanması ve rahatlaması doğrulandı. Bu, son yıllarda oküler yorgunlukla ilgili yürütülen büyük ölçekli randomize, çift kör, plasebo kontrollü klinik çalışmalardan biridir. Mevcut denemeye dahil edilen denekler, oküler yorgunluğu olan sağlıklı bireylerdi. SBE grubundaki denekler, 12 hafta boyunca günde bir kez 240 mg SBE tüketmiştir.

                Referans olarak her deneğin minimum kırılması ile, hedefi sekiz adımda uzaktan yakın konumlara taşıdık ve uyumlu mikro dalgalanmanın HFC frekansını ölçtük. Bu değerler, "Akomodatif fonksiyon ölçüm yazılımı AA-2" tarafından HFC [ 15 ] olarak sayısallaştırıldı . HFC, siliyer kasın titreşimi yoluyla üretilir ve aşırı yük ile artar [ 16 , 17] .]. Subjektif semptomları basit bir anket yoluyla inceleyen ve HFC değerlerini ölçen bir çalışmada, çok fazla oküler yorgunluk yaşamayan deneklerle karşılaştırıldığında, rutin olarak oküler yorgunluk yaşayanların VDT ​​görevlerini takiben HFC'de daha fazla artışa sahip olduğu görüldü. Ek olarak, VDT görevlerinin gözlerini yorduğunu veya aşırı derecede yorduğunu söyleyen denekler, sadece hafif veya az oküler yorgunluk yaşayan deneklerle karşılaştırıldığında HFC'de daha büyük bir artış gösterdi [18 ] . Bu nedenle, HFC subjektif oküler yorgunluk ile yeterince ve spesifik olarak ilişkilidir ve oküler yorgunluğu değerlendirmek için yaygın olarak kullanılır [ 12 , 19 , 20 ]. Ek olarak, SBE tüketiminin oküler yorgunluk üzerindeki etkilerini doğrulamak için HFC kullandık [ 8, 9 ]. Mevcut denemede, minimum kırılmadan -0.75 D'ye kadar olan aralığı HFC-1 aralığı olarak tanımladık ve oküler yorgunluğu değerlendirmek için HFC-1 aralık fraksiyonundaki ortalama HFC'yi kullandık. Her gruptaki tüketim öncesi değerlerin etkisini ortadan kaldırmak için ANCOVA kullanarak gruplar arası karşılaştırma yaptık.

                Sürekli SBE tüketimi nedeniyle, plasebo grubuyla karşılaştırıldığında, VDT sonrası yük HFC-1 değerleri 8. ve 12. haftalarda önemli bir gelişme gösterdi; bu, SBE'nin VDT ​​yüküne yanıt olarak siliyer kasların tonik akomodasyonunu baskıladığını düşündürür. SBE tüketiminin 8 ila 12. haftaları arasındaki gözlemlenebilir etkiler, 12 haftalık uzun süreli SBE tüketiminin etkinliğini azaltmayacağını göstermektedir.

                Yaban mersini özündeki antosiyanin, flavilyum iyon yapısına sahip yüksek oranda çözünür bir antioksidandır [ 21 ]. Oküler dokularda bulunur [ 22 ] ve vücuttaki çeşitli inflamatuar faktörleri baskılar [ 23 ]. Antosiyaninlerin kandan siliyer kasına göç etmesi ve dağılması mümkün olduğundan, siliyer kastaki gerilimi baskılayabilir ve rahatlatabilir, böylece oküler yorgunluğu potansiyel olarak azaltabilirler.

                Sonuç olarak, bu çalışma, 240 mg SBE'nin 12 haftalık oral tüketiminin, VDT görevlerinin ve yakın görüş görevlerinin neden olduğu siliyer kasların tonik uyumunu iyileştirdiğini ve rahatlattığını gösterdi.

                Git: teşekkürler

                İlaç Değerlendirme Araştırma Merkezi ve K Medical Office TOC Building Clinic'in tüm personeline özverili işbirlikleri için minnettarız. İstatistiksel analizleri gerçekleştiren Yeni İlaç Araştırma Merkezi A.Ş. üyelerine de teşekkür etmek isteriz. Son olarak, Omnica Co., Ltd.'nin tüm üyelerine bu araştırmaya verdikleri paha biçilmez destek için teşekkür etmek isteriz.

                Git: Kısaltmalar
                HFC yüksek frekanslı bileşen
                SBE standartlaştırılmış yaban mersini özü
                VDT görsel ekran terminalleri
                VMA Vaccinium myrtillus antosiyanin
                Git: Tamamlayıcı Malzemeler

                Aşağıdakiler çevrimiçi olarak https://www.mdpi.com/2072-6643/12/3/600/s1 adresinde mevcuttur , Şekil S1: CONSORT 2010 Akış Diyagramı, Tablo S1: Rastgele seçilmiş bir raporu bildirirken dahil edilecek bilgilerin CONSORT 2010 kontrol listesi duruşma.
                Ek veri dosyası için buraya tıklayın. (254K, pdf)
                Git: Yazar Katkıları


                Kavramsallaştırma, MK; Metodoloji, MK ve NK; Biçimsel analiz, MK; Veri iyileştirme, MK ve NM; Proje yönetimi, MK; Yazma—Orijinal Taslak Hazırlama, MK ve NM; Yazma–Gözden Geçirme ve Düzenleme, MK ve NK Tüm yazarlar, makalenin yayınlanan sürümünü okudu ve kabul etti.

                Git: Finansman


                Bu çalışma, Omnica Co., Ltd., Japonya'dan sağlanan fonla desteklenmiştir.

                Git: Çıkar çatışmaları


                MK ve NM, Omnica Co., Ltd., Japonya'nın çalışanlarıdır.

                Git: Referanslar

                1. 2008 Teknolojik Yenilikler ve İşgücü Araştırmasının Anahatları. Sağlık, Çalışma ve Refah Bakanlığı. [(19 Aralık 2019'da erişildi)];Çevrimiçi olarak erişilebilir: https://www.mhlw.go.jp/toukei/list/48-20.html
                2. Bilgi ve İletişim Ortamlarının Kullanım Süresi ve Bilgi Davranışına İlişkin 2018 Araştırması. İçişleri ve Haberleşme Bakanlığı. [(12 Şubat 2020'de erişildi)];Çevrimiçi olarak erişilebilir: https://www.soumu.go.jp/iicp/researc...sage-time.html
                3. Japonya'da Bilgi İletişimine İlişkin 2017 Beyaz Kitap. İçişleri ve Haberleşme Bakanlığı. [(19 Aralık 2019'da erişildi)];Çevrimiçi olarak erişilebilir: http://www.soumu.go.jp/johotsusintok...pdf/index.html
                4. Arai S. Japonya'da Fonksiyonel Gıdalar Üzerine Çalışmalar — Son Teknoloji. Biyosci. Biyoteknoloji biyokimya 1996; 60 :9–15. doi: 10.1271/bbb.60.9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                5. Juadjur A., ​​Mohn C., Schantz M., Baum M., Winterhalter P., Richling E. Antosiyanin Açısından Zengin Yabanmersini Ekstraktının Fraksiyonlanması ve in Vitro Antioksidatif Aktivite Testi. Gıda Kimyası 2015; 167 :418–424. doi: 10.1016/j.foodchem.2014.07.004. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                6. Gizzi C., Belcaro G., Gizzi G., Feragalli B., Dugall M., Luzzi R., Cornelli U. Yabanmersini özleri eşit yaratılmamıştır: Antosiyanin olmayan fraksiyonun rolü. Bir ön çalışmada "gücün karanlık tarafını" keşfetmek. Avro. Rahip Med. Eczane. bilim 2016; 20 :2418–2424. [ PubMed ] [ Google Akademik ]
                7. Kosehira M., Kitaichi N. Standart yaban mersini özü ile oküler yorgunluğun iyileştirilmesi. Jpn. Eczane. orada. 2015; 43 :397–403. [ Google Akademik ]
                8. Kosehira M., Takao H., Hayama R., Horie Y., Kitaichi N. Yaban mersini meyvelerinden elde edilen spesifik antosiyanin tüketimi ile VDT yüklü oküler yorgunluktan kurtarma. Jpn. Eczane. orada. 2015; 43 :1339–1346. [ Google Akademik ]
                9. Kosehira M., Kageyama M., Kamohara S., Kitaichi N. Standart yaban mersini özü içeren gıdaların tüketilmesiyle oküler yorgunluğun bastırılması: Randomize, çift kör, plasebo kontrollü, çapraz çalışma. Jpn. Eczane. orada. 2015; 43 :1741–1749. [ Google Akademik ]
                10. Kosehira M., Kitaichi N. Kanıta dayalı yaban mersini özütünün astenopi üzerindeki klinik etkileri. İçinde: Carrera M., Gil A., Martinez JA, editörler. Annals of Nutrition and Metabolism IUNS 21st International Congress of Nutrition, Buenos Aires, Arjantin, 15–20 Ekim 2017. The Nutrition Society; Londra, Birleşik Krallık: 2017. s. 1184. 144/987. [ Google Akademik ]
                11. Campbell FW, Robson JG, Westheimer G. Sabit Görüntüleme Koşulları Altında Konaklama Dalgalanmaları. J. Physiol. 1959; 145 :579–594. doi: 10.1113/jphysiol.1959.sp006164. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                12. Kajita M., Umigai N., Nakano T., Amano H., Takeno R., Kajimoto O. Yüksek krosetin içerikli gardenya jasminoides ellis ekstraksiyonunun astenopi üzerindeki etkisi. Jpn. J.Vis. bilim 2007; 28 :77–84. [ Google Akademik ]
                13. Winn B., Pugh JR, Gilmartin B., Owens H. Arteriyel nabız kararlı durum oküler akomodasyonu modüle eder. Curr. Göz Çöz. 1990; 9 :971–975. doi: 10.3109/02713689009069933. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                14. Gray LS, Winn B., Gilmartin B. Hedef parlaklığının akomodasyonun mikro dalgalanmaları üzerindeki etkisi. Oftalmik Fizyol. tercih 1993; 13 :258–265. doi: 10.1111/j.1475-1313.1993.tb00468.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                15. Kajita M. Akomodasyon analizörü AA-2'nin klinik uygulaması. J. Göz. 2016; 33 :467–476. [ Google Akademik ]
                16. Kajita M. Bağdaştırıcı Tepki ve Mikro Dalgalanma. Oftalmoloji. 1998; 40 :169–177. [ Google Akademik ]
                17. Kajita M., Ono M., Suzuki S., Kato K. Akomodatif spazmın neden olduğu astenopide akomodatif mikro dalgalanma. Fukuşima J. Med. bilim 2001; 47 :13–20. doi: 10.5387/fms.47.13. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                18. Kajita M., Shinohara M., Suzuki S. Japonya Oftalmologlar Derneği Bilgisayarla Görme Sendromu ve Çevresel Faktörler Araştırma Grubu 2002–2004 Başarı Koleksiyonu. Japonya Oftalmologlar Derneği; Japonya, Tokyo: 2005. BT cihazlarının kullanımıyla akomodatif işlevdeki değişikliklerin incelenmesi; s. 100–103. [ Google Akademik ]
                19. Kajita M. Refraktif düzeltmede akomodatif fonksiyonun rolü: Astenopinin tıbbi tedavi ile anlaşılabilecek yönleri. Jpn. J.Vis. bilim 2012; 33 :138–146. [ Google Akademik ]
                20. Okita Y., Kimura A., Masuda A., Kasai I., Mimura O. Gözlük tipi giyilebilir bir cihazın görsel işlev ve göz yorgunluğu üzerindeki etkisi. Nöro-Oftalmol. Jpn. 2017; 34 :435–442. [ Google Akademik ]
                21. Terahara N. Antosiyaninin yapısı ve özellikleri. İçinde: Tsuda T., Suda I., Tsushida T., editörler. Antosiyanin Bilimi. 1. baskı Kanpakuşa; Tokyo, Japonya: 2009. sayfa 9–31. [ Google Akademik ]
                22. Kalt W., Blumberg JB, McDonald JE, Vinqvist-Tymchuk MR, Fillmore SA, Graf BA, O'Leary JM, Milbury PE Yaban mersini ile beslenen domuzların karaciğeri, gözü ve beynindeki antosiyaninlerin tanımlanması. J. Agric. Gıda Kimyası 2008; 56 :705–712. doi: 10.1021/jf071998l. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                23. Luo H., Lv XD, Wang GE, Li YF, Kurihara H., He RR Yaban mersini ( Vaccinium myrtillus L. ) antosiyanin açısından zengin özütünün kroton yağı kaynaklı kulak ödemi ve Propionibacterium acnes artı LPS üzerindeki anti-enflamatuar etkileri Farelerde indüklenen karaciğer hasarı. Int. J. Gıda Bilimi Nutr. 2014; 65 :594–601. doi: 10.3109/09637486.2014.886184. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                Yorum yap


                • #9


                  Vaccinium myrtillus Yapraklarının Güncellenmiş Sistematik Bir İncelemesi : Fitokimya ve Farmakoloji

                  Ruxandra Ștefănescu , 1, * † Eszter Laczkó-Zöld , 1, † Bianca-Eugenia Ősz , 2 ve Camil-Eugen Vari 2
                  Maria Rosaria Lauro, Akademik Editör
                  Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                  1 Farmakognozi ve Fitoterapi Anabilim Dalı, Eczacılık Fakültesi, George Emil Palade Tıp Üniversitesi, Eczacılık, Targu Mures Bilim ve Teknolojisi, 540139 Targu Mures, Romanya
                  2 Farmakoloji ve Klinik Eczacılık Anabilim Dalı, Eczacılık Fakültesi, George Emil Palade Tıp Üniversitesi, Eczacılık, Targu Mures Bilim ve Teknolojisi, 540139 Targu Mures, Romanya
                  * Yazışma: or.tsfmu@ucsenafets.ardnaxur veya moc.oohay@ciarb.ardnaxur
                  † Bu yazarlar bu çalışmaya eşit katkıda bulunmuştur.

                  İlişkili Veriler

                  Veri Kullanılabilirliği Bildirimi
                  Git: Soyut

                  Yaban mersini yaprakları birçok ülkede çok çeşitli hastalıkları tedavi etmek için geleneksel tıpta kullanılmaktadır. Vaccinium myrtillus (VM) yapraklarının yüksek terapötik potansiyeli nedeniyle bu derleme, bu bitkisel ilacın terapötik etkilerinin yanı sıra fitokimyasal profil hakkındaki en son bilgileri sunmayı amaçlamaktadır. İnceleme, Prisma yönergelerine göre yapıldı ve bilimsel veritabanları aşağıdaki anahtar kelimelerin kombinasyonları kullanılarak tarandı: “ Vaccinium myrtillus”, “yapraklar”, “yaban mersini”. Son araştırmalar, abiyotik faktörlerin fitokimyasal bileşim üzerindeki etkisine odaklandı ve farklı ülkelerden toplanan bitkisel ilaçlar arasında önemli farklılıklar olduğu görülüyor. Fitokimyasal bileşim, geniş farmakolojik etki yelpazesi ile ilişkilidir. Makale, VM ekstraktlarının çoklu ilaca dirençli bakteri suşlarına karşı güçlü antimikrobiyal aktivitesini ve ayrıca farklı metabolik değişikliklerde fitobileşenlerin benzersiz "kokteyli" tarafından modüle edilen yolları özetlemektedir. Son 10 yılda yayınlanan araştırma makalelerine bakıldığında, yaban mersini yapraklarının fitokimyasal ve farmakolojik özellikleri benzersiz olmasına rağmen biraz unutulduğu görülmektedir.

                  Anahtar Kelimeler: yabanmersini, yapraklar, Vaccinium myrtillus , fitokimya
                  Git: 1. Giriş


                  Vaccinium myrtillus , Vaccinium cinsi Ericaceae familyasından Avrupa, Asya ve Kuzey Amerika'nın dağlık bölgelerinde yetişen bir çalıdır. Yapraklar, diyabet tedavisi için farklı ülkelerde geleneksel tıpta kullanılmaktadır. Şimdiye kadar, bu etkiden sorumlu olan bileşiklerle ilgili herhangi bir ilgili bilgi yoktur, sadece varsayımlar vardır [ 1 ]. İngiliz Farmakopesinde olduğu gibi Avrupa Farmakopesinde de yaban mersini meyveleriyle ilgili üç monograf vardır (Yaban mersini meyvesi, taze; yaban mersini meyvesi, kurutulmuş; taze yabanmersini meyvesi kuru ekstresi, rafine edilmiş ve standardize edilmiş), ancak hiçbiri yapraklarla ilgili değildir [ 2]. Avrupa İlaç Ajansı ayrıca yaban mersini meyveleri için iki monograf dahil etti, ancak yaban mersini yaprakları için hiçbir monograf içermedi [ 3 ]. Bildiğimiz kadarıyla, yaban mersini yapraklarının (Myrtilli folium) en bilinen Farmakopelerde bir monografisi yoktur.

                  Oksidatif stresin keşfedilip tanımlanmasından bu yana, birçok çalışma serbest radikallere karşı koruyucu bir rol oynayan doğal kaynakları vurgulamaya odaklandı [ 4 ]. Listenin başında, hem in vitro hem de in vivo çalışmalarda dikkate değer bir antioksidan kapasitesinin gösterildiği fenolik bileşikler yer alır [ 5 ]. Polifenolik bileşiklerin kaynakları arasında Ericaceae familyasından türler kaydedilmiştir [ 6 ]. Ekin türleri, fitokimyasal içerikteki varyasyonların küçük olması için belirli faktörlerin kontrol edilebildiği gelişmiş bir varyant olmasına rağmen, yabani türler, hasat kontrol altında tutulduğu sürece ve doğaya herhangi bir zarar vermeden her zaman olağanüstü bir terapötik olarak aktif bileşik kaynağı olmaya devam edecektir. ekosistem.

                  Fitoterapide bir diğer önemli konu da doğal bileşiklerin antibakteriyel etkileridir. Çoklu ilaca dirençli bakteriyel patojenler nedeniyle, antibiyotik ilaç araştırmaları mutlak bir gerekliliktir.

                  Literatürde iyi bir şekilde belgelenmiş olan pedo-iklimsel koşulların etkisi, bitkisel ilaçların kimyasal bileşenleri arasındaki gözle görülür farklılıklardan ve ayrıca bitki ürünlerinin kalitesi üzerinde önemli etkileri olan farklı metallerin birikmesinden sorumlu olan önemli bir faktördür. Bu sistematik incelemenin amacı, Myrtilli folium'un fitokimyası ve farmakolojisi ile ilgili son gelişmeleri sunmak ve bu alandaki en son gelişmeleri özetlemektir. Yaban mersini yaprakları diyabet için pek çok takviyede yer aldığından ancak bunlarla sınırlı olmamak üzere, VM yapraklarıyla ilgili bilgi durumunun dikkatli bir şekilde değerlendirilmesi, gelecekteki araştırmalar için bir başlangıç ​​noktası sağlamak için gereklidir.

                  Bu inceleme, Prisma yönergelerine göre tasarlanmış ve INPLASY2022120029 (10.37766/inplasy2022.12.0029) kayıt numarası ile sistematik derleme olarak kaydedilmiştir. Bu sistematik inceleme için, ana veritabanları şu anahtar kelimelerin kombinasyonları kullanılarak arandı: " Vaccinium myrtillus ", "yabanmersini", "yapraklar". Yalnızca son 10 yılın (2012–2022) makaleleri seçildi. Diğer Vaccinium türleri için veri içeren makalelerin yanı sıra meyveler ve kırmızı yapraklar, ekofizyoloji ve stres toleransı analizini içeren makaleler hariç tutuldu.

                  Web of Science Core Collection, PubMed ve Scopus'ta (Haziran 2022) yapılan arama sonucunda toplam 197 yayın (derleme, araştırma makalesi, kısa bildiriler ve bildiriler belgesi) elde edildi. Tespit edilen tüm makaleler, kopyaları kaldırmak ve ilgili makaleleri seçmek için referans yönetici yazılımında (Mendeley) bir araya getirildi. Özeti veya bazı durumlarda tam metni okuduktan sonra, toprak bilimi, ekoloji, bitki patolojisi ve hücre kültürü ile ilgili yayınların yanı sıra diğer Vaccinium türleri ve Vaccinium myrtillus meyveleri hakkındaki makaleler hariç tutuldu. Bu seçimin ardından geriye 64 yayın kalmış ve 10 yıllık dağılım şu şekilde gösterilmiştir:Şekil 1. Bu yayınlardan bazıları (altı araştırma makalesi), poliherbal formülasyonların/bitki karışımlarının [ 7 , 8 , 9 , 10 ] farmakolojik etkisini veya biyoaktif bileşiklerini bildirdi ve Ieri ve ark. yaban mersinin tomurcuk ekstraktının analizi için sonuçları rapor eder [ 11 ].
                  Resim, çizim vb. içeren harici bir dosya. Nesne adı: pharmaceutics-15-00016-g001.jpg
                  Şekil 1
                  2012'den 31 Haziran 2022'ye kadar yayınlarda “ Vaccinium myrtillus ” ve “yapraklar” terimlerini içeren araştırma eğilimi (Web of Science Core Collection tarafından indekslenmiştir).

                  Git: 2. Kimyasal Bileşim
                  2.1. Toplam Polifenoller

                  Yaban mersini yaprakları, terapötik etkilerinin çoğundan sorumlu olduğu varsayılan şaşırtıcı çeşitlilikte polifenolik bileşikler içerir.

                  Polifenolik bileşiklerin kantitatif tespiti, Singleton ve diğerleri tarafından geliştirilen yönteme dayanan standart bir tespittir. [ 12 ]. Sonuçlar değerli bilgiler sağlar ve eksiksiz bir fitokimyasal analizde bir başlangıç ​​noktasını temsil eder. Araştırmacıların çoğu içeriği kuru ağırlığa göre ifade etmiş; bu nedenle, farklı laboratuvarlarda elde edilen nicel veriler karşılaştırılabilir (tablo 1). Kimyasal bileşim, geliştirme aşamasından büyük ölçüde etkilenir; ülkenin yalnızca ikincil metabolitlerin kimyasal birikiminde değil, aynı zamanda pedoklimatik faktörlerde de önemli bir rol oynadığı coğrafi köken önemli bir belirleyicidir. Son olarak, bildirilen toplam polifenolik içerik (TPC), ekstraksiyon yönteminden büyük ölçüde etkilenir. Da gösterildiği gibitablo 1, TPC geniş bir aralıkta değişir. Polifenollerin ekstraksiyonu için genellikle sulu-alkollü çözücüler kullanılır. Polifenollerin ekstraksiyonu için optimizasyon yöntemleri genellikle %50-70 etanolün en iyi verimi verdiğini göstermiştir. tablo 1


                  Çeşitli çalışmalarda bildirilen toplam polifenolik içerik.
                  500–850 %80 metanol Polonya [ 13 ]
                  33–66 %40 etanol Bulgaristan [ 14 ]
                  76.73 su-gliserin 80:20 Polonya [ 15 ]
                  54,7–106,9 %1 sulu sitrik asit Romanya [ 16 ]
                  399,94 aseton-su 70:30 Polonya [ 17 ]
                  173–218 %70 etanol Karadağ [ 18 ]
                  35,9–229,8 %75 metanol (taze bitki) Litvanya [ 19 ]
                  218 %70 etanol Karadağ [ 20 ]
                  119.17 su Bosna Hersek [ 21 ]
                  107.79 etanol
                  66.76 Etil asetat
                  99.3 %50 etanol Ukrayna [ 22 ]
                  68.84 metanol-askorbik asit-asetik asit Polonya [ 23 ]
                  Ayrı bir pencerede aç
                  GAE—gallik asit eşdeğerleri; DW—kuru ağırlık.

                  2.2. Toplam Flavonoidler
                  Flavonoidler, bitkisel ilaçların toprak üstü kısımlarında büyük miktarlarda bulunan önemli bir polifenolik bileşik sınıfıdır. Birikmeleri sıklıkla abiyotik ve biyotik stres faktörlerinden etkilenir. TPC ile karşılaştırıldığında, farklı bölgelerde belirlenen flavonoidlerin konsantrasyonu, aşağıda görüldüğü gibi daha az değişkendir.Tablo 2. Flavonoidler bitkilerde iki şekilde bulunur: serbest aglikonlar ve glikozidik formda. Glikozitler, serbest aglikonlarla karşılaştırıldığında daha yüksek bir polariteye sahiptir. Formlar genellikle bileşiğin farmakokinetiğini etkiler. Toplam flavonoidler içinde kuersetin türevleri, özellikle kuersetin 3-O-rutinosid ve kuersetin 3-O-galaktozid büyük bir yüzdeyi temsil eder. Kaempferol glikozitler, yaban mersini yapraklarında en bol bulunan ikinci flavonoidlerdir.

                  Tablo 2

                  Farklı çalışmalarda bildirilen toplam flavonoid içeriği.
                  12–35 Bulgaristan [ 14 ]
                  16.36 Polonya [ 15 ]
                  25.92 Polonya [ 17 ]
                  14.6–23.8 Karadağ [ 18 ]
                  8–40 Litvanya [ 19 ]
                  21.5 Karadağ [ 20 ]
                  19.3 Ukrayna [ 22 ]
                  Ayrı bir pencerede aç
                  QE—quercetin eşdeğerleri.

                  2.3. Tanen İçeriği
                  Tanenler, polifenolik bileşiklerin önemli bir alt grubudur. Spesifik olmayan ishalin tedavisinde yüksek konsantrasyonda tanen içeren bitkisel ürünler kullanılmaktadır. Bununla birlikte, tanenler, bazı yazarlar tarafından, bazı metallerin şelat oluşturma yeteneklerinden dolayı, antinutrient etkiye sahip bileşikler olarak kabul edilmektedir. Örneğin, tanenler vücutta demirin emilmesini engeller, bu da artan tüketim durumunda veya belirli durumları olan hasta gruplarına (çocuklar, hamile kadınlar, yaşlılar) uygulama durumunda demir eksikliği anemisine yol açabilir. Bitkisel ürünlerdeki tanenlerin kantitatif tayini, genellikle Avrupa Farmakopesinde açıklanan, toplam polifenolik içeriği ve standart post tozu üzerinde emilmeyen polifenolleri ölçen dolaylı bir yöntemle gerçekleştirilir [ 2]. Yaban mersini yaprakları, örneğin %0,8 ile %6,7 arasında yüksek konsantrasyonlarda tanen içerir.Tablo 3[ 24 ].

                  Tablo 3
                  Farklı çalışmalarda bildirilen toplam tanen içeriği.
                  1,54 (hidrolize edilebilir, HPLC) Polonya [ 17 ]
                  6.49–9.17 Karadağ [ 18 ]
                  9.17 Karadağ [ 20 ]
                  Ayrı bir pencerede aç
                  Yoğunlaştırılmış tanenler olarak da bilinen proantosiyanidinler, flavan-3-ollerin oligomerleri ve polimerleridir. Proantosiyanidinlerin en çok karşılaşılan monomerik birimleri (+) kateşin ve (-) epikateşindir ve bu birimler genellikle A tipi veya B tipi bağlantılara sahiptir. B tipi proantosiyanidinler, bir C4-C8 veya bir C4-C6 interflavan bağına sahipken, A tipi proantosiyanidinler, tamamlayıcı bir C2-C7 veya C2-C5 eter bağına sahiptir. B tipi proantosiyanidinler, farklı bitkisel ilaçlarda yaygın olarak bulunur, ancak A tipi proantosiyanidinler, yalnızca Vaccinium macrocarpon, Cinnamomum sp., vb . gibi birkaç bitkide bulunur [ 25 , 26 , 27 ]. Yaban mersini yaprakları esas olarak prosiyanidinler içerir ve bu bileşiklerin numunelerdeki konsantrasyonu gelişme aşamasından etkilenir [6 ]. Son 10 yılda yapraklarda proantosiyanidin konsantrasyonu ile ilgili sadece birkaç rapor vardır ve rapor edilen konsantrasyonlar 2 ile 25.5 mg/g arasındadır. da gösterildiği gibiTablo 4.

                  Tablo 4
                  Farklı VM yaprak örneklerinde belirlenen toplam proantosiyanidin konsantrasyonu.
                  2–5 Bulgaristan [ 14 ]
                  8.03 Polonya [ 15 ]
                  25.45 Polonya [ 17 ]
                  24.75 Polonya [ 23 ]
                  Ayrı bir pencerede aç

                  2.4. Vaccinium myrtillus Yapraklarında Tanımlanan Bireysel Bileşikler

                  VM yaprakları karmaşık ve benzersiz bir bileşime sahiptir ve fenolikler ana bileşenleri temsil eder. İçindeTablo 5VeTablo 6, yaban mersini yapraklarında tespit edilen kimyasal bileşikler sunulmaktadır. Polifenoller arasında hidroksisinamik asitler, flavanoller, flavonoller, flavonolignanlar ve hatta eser miktarda antosiyaninler tanımlanmıştır. Fenolik bileşiklerin yanı sıra yapraklarda az miktarda triterpen ve fitosterol bulunabilir ve şimdiye kadar 70'den fazla ayrı bileşik tanımlanmıştır. Ekstraktlarda kantitatif olarak hidroksibenzoik asitler ve hidroksisinnamik asit türevleri baskındır.

                  Daha önce açıklandığı gibi, farklı bölgelerden toplanan bitkisel ilaçlardaki kimyasal bileşiklerin konsantrasyonuna ilişkin birçok farklılık vardır. Çoğunlukla tek tek bileşiklerin nispi oranlarında ve ayrıca bazı bileşenlerin varlığında veya yokluğunda gözlemlenen bu farklılıkların çoğundan muhtemelen çevresel faktörler sorumludur. Ekstraksiyon koşulları, ekstraktların fitokimyasal profilini de etkiler; örneğin, yüksek sıcaklıklar ve alkalinite, epikateşinin kateşine epimerizasyonunu indükler [ 28 ].

                  3-O-Kafeoilkinik asit olarak da bilinen klorojenik asit, kafeik asit ve kinik asidin esteridir ve feruloilkinik asitle birlikte VM yapraklarındaki baskın fenolik asittir [18 , 29 , 30 ] . Tian ve arkadaşlarına göre, Finlandiya'dan toplanan analiz edilen örneklerde bulunan ana fenolik bileşikler, baskın bileşik olan 3-O-Kafeoilkinik asit olmak üzere, Kafeoilkinik asitlerdir [31 ] .

                  İlginç bir şekilde, gallik asit sadece Türkiye'den alınan örneklerde önemli miktarlarda rapor edilmiştir [ 32 ]. Bljajic ve ark. hidrolize ekstraktlarda yüksek bir protokatekuik asit konsantrasyonu bildirmiştir [ 33 ].

                  Tablo 5

                  Yaban mersini yapraklarında tanımlanan bireysel polifenoller.
                  Hidroksisinamik Asitler Konsantrasyon Aralığı
                  mg/g DW
                  Menşei ülke Referans
                  Klorojenik asit 10.04–22.34 Bulgaristan [ 14 ]
                  3,34–5,94 Romanya [ 29 ]
                  11.21–20.82 Bosna Hersek [ 33 ]
                  45,51–59,7 Karadağ [ 18 ]
                  0.07 Makedonya [ 34 ]
                  1.25–4.14 Türkiye [ 32 ]
                  104.7 Romanya [ 30 ]
                  nq Finlandiya [ 35 ]
                  nq Polonya [ 36 ]
                  nq İtalya [ 11 ]
                  neoklorojenik asit 0,34–3,72 Karadağ [ 18 ]
                  2.2 Makedonya [ 34 ]
                  nq İtalya [ 11 ]
                  kafeik asit 2,67–5,9 Bulgaristan [ 14 ]
                  1,25–1,95 Karadağ [ 18 ]
                  3.3–28.2 Türkiye [ 32 ]
                  3.06 Romanya [ 30 ]
                  nq Polonya [ 23 ]
                  nq İtalya [ 11 ]
                  p-Kumarik asit 6.37–12.95 Bulgaristan [ 14 ]
                  0,32–11,9 Bosna Hersek [ 33 ]
                  1.26–2.08 Karadağ [ 18 ]
                  8.5–17.6 Türkiye [ 32 ]
                  nq İtalya [ 11 ]
                  p-Kumaroilkinik asit 0.07 Makedonya [ 34 ]
                  nq İtalya [ 11 ]
                  p-Kumaroylhexoside nq Romanya [ 16 ]
                  Ferulik asit 0.11–0.28 Montenegro [18]
                  3.1–10 Turkey [32]
                  trans-Ferulic acid 10.95–24.9 Turkey [32]
                  Feruloylquinic acid 47.66–59.65 Romania [29]
                  3,4-Dicaffeoylquinic acid 0–4.05–5.01 Romania [29]
                  3-O-Caffeoylshikimic acid n.q. Romania [16]
                  n.q. Italy [11]
                  Sinapic acid 0.18–0.63 Montenegro [18]
                  Hydroxybenzoic acids Concentration range
                  mg/g DW
                  Country of origin Reference
                  Gallic acid 0.54–0.8 Montenegro [18]
                  67.4–352.3 Turkey [32]
                  Syringic acid 32.5–203 Turkey [32]
                  Protocatechuic acid 176.45 Bosnia and Herzegovina [33]
                  1.4–1.74 Montenegro [18]
                  Vanillic acid 20.8–1156.8 Turkey [32]
                  Other polyphenols
                  Pyrogallol 2.45–3.46 Montenegro [18]
                  Resveratrol 4.6–5.15 Montenegro [18]
                  1.5–8.9 Turkey [32]
                  Flavanols Concentration range
                  mg/g DW
                  Country of origin Reference
                  Gallocatechin 4.84–15.37 Romania [29]
                  n.q. Hungary [37]
                  Epigallocatechin n.d.–6.56 Romania [29]
                  18.2–197.8 Turkey [32]
                  n.q. Hungary [37]
                  Catechin 4.79–9.87 Romania [29]
                  7.3–95.6 Turkey [32]
                  2.32 Romania [30]
                  n.q. Finland [35]
                  0.21 Macedonia [34]
                  n.q. Hungary [37]
                  Epicatechin n.d.–9.66 Romania [29]
                  4.38–5.75 Montenegro [18]
                  10.1–84.1 Turkey [32]
                  1.95 Romania [30]
                  n.q. Romania [16]
                  n.q. Finland [31,35]
                  n.q. Hungary [37]
                  Procyanidin B2 0.31–1.03 Montenegro [18]
                  Procyanidin dimer I 5.55 Romania [30]
                  Procyanidin dimer II 8.7–12.68 Romania [29]
                  Procyanidin trimer 10.09–24.30 Romania [29]
                  Procyanidin trimer B n.q. Italy [11]
                  B-type procyanidin dimer I n.q. Finland [31,35]
                  B-type procyanidin dimer II n.q. Finland [35]
                  B-type procyanidin dimer III n.q. Finland [35]
                  Type A/B procyanidin trimer n.q. Finland [35]
                  n.q. Italy [11]
                  A-type procyanidin trimer n.q. Estonia [38]
                  B-type procyanidin trimer n.q. Finland [35]
                  n.q. Estonia [38]
                  Proanthocyanidin tetramer B n.q. Italy [11]
                  Proanthocyanidin pentamer B n.q. Italy [11]
                  Flavonols Concentration range
                  mg/g DW
                  Country of origin Reference
                  Luteolin 5-O-rutinoside n.q. Hungary [37]
                  Myricetin 49.4–237.6 Turkey [32]
                  Quercetin 3-O-rutinoside 42.24–49.83 Romania [29]
                  4.73–4.94 Montenegro [18]
                  0.87 Macedonia [34]
                  n.q. Hungary [37]
                  n.q. Italy [11]
                  Quercetin 3-O-glucoside 1.29–2.37 Romania [29]
                  9.92–16.2 Montenegro [18]
                  14.5 Romania [30]
                  n.q. Romania [16]
                  n.q. Italy [11]
                  Quercetin 3-O-rhamnoside n.q. Finland [35]
                  1.65 Romania [30]
                  n.q. Romania [16]
                  0.11 Macedonia [34]
                  Quercetin-acetyl-rhamnoside 12.67–18.6 Romania [29]
                  0.98 Romania [30]
                  Quercetin 3-O-arabinoside 1.39–1.55 Romania [29]
                  0.64 Romania [30]
                  0.21 Macedonia [34]
                  n.q. Finland [35]
                  n.q. Italy [11]
                  Quercetin-xyloside 1.3–1.53 Romania [29]
                  Quercetin glucosyl-xyloside 0.7 Romania [30]
                  Quercetin-diglucoside 0.17–1.42 Romania [29]
                  Quercetin 3-O-galactoside 32.16–44.43 Bosnia and Herzegovina [33]
                  2.38–2.55 Montenegro [18]
                  2.45 Macedonia [34]
                  n.q. Finland [31,35]
                  n.q. Romania [16]
                  n.q. Hungary [37]
                  n.q. Poland [23]
                  Quercetin 3-O-glucuronide n.q. Finland [31,35]
                  n.q. Hungary [37]
                  n.q. Italy [11]
                  Quercetin-hexuronide n.q. Romania [16]
                  Quercetin 3-sambubioside n.q. Hungary [37]
                  Quercetin 1.16–3.69 Romania [29]
                  24.75–85.64 Bosnia and Herzegovina [33]
                  1.16–7.27 Montenegro [18]
                  2.1–11.4 Turkey [32]
                  n.q. Hungary [37]
                  Kaempferol 3-O-glucoside 1.38–1.6 Montenegro [18]
                  Kaempferol 3-O-glucuronide n.q. Finland [35,39]
                  n.q. Italy [11]
                  Kaempferol-rhamnoside n.q. Finland [35]
                  Kaempferol-hexuronide n.q. Romania [16]
                  Kaempferol 3.45 Bosnia and Herzegovina [33]
                  0.03–0.26 Montenegro [18]
                  1.6–3.4 Turkey [32]
                  Taxifolin n.q. Hungary [37]
                  Flavanolignanlar
                  Cinchonain ben nq İtalya [ 11 ]
                  Cinchonain II nq İtalya [ 11 ]
                  antosiyaninler Konsantrasyon aralığı
                  µg/g DW
                  Menşei ülke Referans
                  Siyanidin-glukozit nd–0,29 Romanya [ 29 ]
                  nd–1.06 Türkiye [ 32 ]
                  Siyanidin-arabinosid nd–0.3 Romanya [ 29 ]
                  Siyanidin-asetil-glukozit nd–0.33 Romanya [ 29 ]
                  Malvidin 3-O-glukozit nd–1.2 Türkiye [ 32 ]
                  Ayrı bir pencerede aç
                  nd—tespit edilmedi; nq—bileşikler yalnızca tanımlandı ancak miktarları belirlenmedi.

                  Yaban mersini yapraklarında bulunan flavonol glikozitler, aglikon olarak kuersetin veya kampferol içerir (şekil 2).
                  Resim, çizim vb. içeren harici bir dosya. Nesne adı: pharmaceutics-15-00016-g002a.jpg
                  Resim, çizim vb. içeren harici bir dosya. Nesne adı: pharmaceutics-15-00016-g002b.jpg
                  şekil 2
                  Yaban mersini yapraklarında bulunan başlıca polifenollerin kimyasal formülleri; ( A )—Kuersetin 3-O-rutinosid; ( B )—Kuersetin 3-O-galaktozit; ( C )—Catechin; ( D )-epikatekin; ( E )-gallokateşin; ( F )-epigallokateşin; ( G )—Klorojenik asit; ( H )—Feruloykinik asit.

                  Proantosiyanidinler monomerik birimlerine göre 13 sınıfa ayrılır, ancak prosiyanidinler, prodelfinidinler ve pelargonidinlere sıklıkla rastlanır. Polimerizasyon derecesi 2-4 arasında olan proantosiyanidinler oligomer olarak kabul edilir ve polimerizasyon derecesi 4'ten büyük olanlar polimer olarak kabul edilir, ancak bu sınıflandırma hala tartışılmaktadır [40 , 41 ] . Da gösterildiği gibiTablo 5V. myrtillus yapraklarında bulunan proantosiyanidinler esas olarak B-tipi dimerler ve trimerler prosiyanidinlerdir. Bu bileşikler, asit hidrolizi yoluyla flavan-3-ollere bölünür.

                  Antosiyaninler, genellikle yaban mersini yapraklarında bulunan bir bileşik sınıfı değildir. Bununla birlikte, güneşe maruz kalmaya bağlı olarak, yüksek güneş radyasyonundan etkilenen karmaşık bir düzenleyici mekanizma nedeniyle yaban mersini yapraklarında az miktarda antosiyanin tespit edilmiştir [ 42 ]. Ayrıca antosiyaninlerin varlığı, antosiyaninleri prosiyanidinlerden salmış olabilecek ekstraksiyon yöntemiyle ilgili olabilir.

                  Tablo 6

                  Yaban mersini yapraklarında tanımlanan triterpenler ve fitosteroller.
                  triterpenler
                  Oleanolik asit 505–655 Bulgaristan [ 43 ]
                  853.2 Finlandiya [ 44 ]
                  873.6 Polonya [ 44 ]
                  ursolik asit 377–815 Bulgaristan [ 43 ]
                  747.7 Finlandiya [ 44 ]
                  776.2 Polonya [ 44 ]
                  Lupeol 20–55 Bulgaristan [ 43 ]
                  24.6 Finlandiya [ 44 ]
                  63.4 Polonya [ 44 ]
                  α-Amirin 102–568 Bulgaristan [ 43 ]
                  711.9 Finlandiya [ 44 ]
                  631.4 Polonya [ 44 ]
                  α-Amirenon 11.7 Finlandiya [ 44 ]
                  22.2 Polonya [ 44 ]
                  β-Amirin 919.1 Finlandiya [ 44 ]
                  987.2 Polonya [ 44 ]
                  β-amirenon 15.4 Finlandiya [ 44 ]
                  34.7 Polonya [ 44 ]
                  22.8 Polonya [ 44 ]
                  hidroksioleanolik asit 50.1 Finlandiya [ 44 ]
                  164.7 Polonya [ 44 ]
                  hidroksiursolik asit 33.9 Finlandiya [ 44 ]
                  115.8 Polonya [ 44 ]
                  fitosteroller
                  Sikloartanol 20.3 Finlandiya [ 44 ]
                  Kampesterol 11.1 Finlandiya [ 44 ]
                  16.7 Polonya [ 44 ]
                  Sitostanol 6.9 Finlandiya [ 44 ]
                  8.2 Polonya [ 44 ]
                  Sitosterol 610.9 Finlandiya [ 44 ]
                  671.4 Polonya [ 44 ]
                  Stigmastadienon 38.3 Finlandiya [ 44 ]
                  20.8 Polonya [ 44 ]
                  Stigmasterol 5.4 Finlandiya [ 44 ]
                  5.2 Polonya [ 44 ]
                  Ayrı bir pencerede aç
                  Triterpenoidlerin içeriği ile ilgili olarak, çoğunun serbest formda nötr triterpenler (β-amirin ve a-amirin kantitatif olarak baskındır), triterpenik asitler ve steroidler olarak mevcut olduğu görülmektedir [44 ] . Triterpenik asitler arasında oleanolik ve ursolik asitler yüksek konsantrasyonlarda bulunur; her ikisi de bitkisel ilaçlarda her yerde bulunan pentasiklik lipofilik bileşiklerdir. Bu asidik triterpenler, yalnızca organik çözücüler kullanıldığında yaban mersini yaprağı özlerinde bulunur [ 45 ]. Serbest terpenoidlere az miktarda ester (çoğunlukla α- ve β-amirin esterleri) eşlik eder [ 44 ].

                  Savych ve ark. yaban mersini doymuş yağ asitlerinin (ana miktarda palmitik asit) ve çoklu doymamış asitlerin (linoleik ve linolenik) yaprakları hakkında rapor edilmiştir [ 8 ].

                  Yapraklar sadece az miktarda uçucu yağ içermesine rağmen, yağdan tanımlanan uçucu bileşikler, güçlü antibakteriyel aktiviteye sahip bilinen bileşiklerdir. Uçucu yağda baskın olan üç terpen 1,8-sineol, alfa-pinen ve linalool olarak tanımlanmıştır [ 46 ].

                  2.5. Makro Elementler ve İz Elementler
                  Çevrenin kirlenmesi nedeniyle bitkilerde ağır metallerin birikmesi tüm besin zincirini etkileyebilmektedir. Vaccinium myrtillus, kirlenmiş toprakların iyi bir göstergesi olan bitki türlerinden biridir. Bu kapasite çevresel araştırmalar için önemli olmakla birlikte, bitkisel ürünler nutrasötik olarak kullanıldığında çok büyük bir olumsuz etkiye sahiptir. Bitkisel ilaçlarda en sık karşılaşılan ağır metaller genellikle arsenik, kurşun ve cıvadır [ 47 ].

                  Eeva ve ark. yaban mersini yapraklarında ağır metallerin birikmesi üzerine metalle kirlenmiş ortamların etkilerini değerlendirmişlerdir. Bitki, kirlenmiş topraktan zehirli elementler de dahil olmak üzere gerekli olmayan elementleri biriktirme eğiliminde olduğundan, bu türün kirli ortamların iyi bir göstergesi olduğu görülüyor (Tablo 7). Bu bulgular, Kandziora-Ciupa ve ark. [ 48 ], kirli alanlarda yapraklardaki Cd ve Pb konsantrasyonunun normal sınırları ciddi şekilde aştığını göstermiştir. Avrupa Farmakopesi 10. Baskı, bitkisel ilaçlardaki kurşun konsantrasyonunu maksimum 5 ppm ile sınırlar [ 2 ]. FDA'ya göre, kurşun için Ara Referans Seviyesi (IRL) bir yetişkin için 12.5 µg/gün ve çocuklar için 3 µg/gün'dür [ 49 ]. Vücutta kurşun hızla emilir ve merkezi sinir sisteminde, organlarda ve kemiklerde dağılır ve dağıtım bölgelerinde ciddi lezyonlara neden olabilir [ 50] .]. Bununla birlikte, ekstraksiyon sırasında, metal içeriğin sadece bir bölümü ekstrakte edilir ve verim, ekstraksiyon yöntemine bağlıdır. Brasanac-Vukanovic ve ark. Karadağ'da toplanan yapraklardan elde edilen ekstraktlar için bildirilen ekstraktlardaki kurşun içeriği önerilen günlük miktarın altındadır [ 18 ]. Genel olarak, herhangi bir endüstriyel alandan veya diğer herhangi bir kirlilik kaynağından uzakta olması gereken toplama yerlerini seçerken özel dikkat gösterilmelidir. Tablo 7


                  Farklı konumlardan toplanan sanal makine yapraklarındaki öğe konsantrasyonları.
                  eleman Konsantrasyon Konum Referans
                  Al 7,45–186,2 µg/g ekstra Karadağ [ 18 ]
                  0,09 mg/g Norveç [ 51 ]
                  98–175 mg/kg Polonya [ 13 ]
                  Gibi 0,059–0,297 µg/g ekstra Karadağ [ 18 ]
                  1,02 µg/g Finlandiya (kirli bölge) [ 52 ]
                  0,02 µg/g Norveç [ 51 ]
                  B 31 mikrogram/g Norveç [ 51 ]
                  Ba 5,36–69,6 µg/g ekstra Karadağ [ 18 ]
                  0,028 mg/g Norveç [ 51 ]
                  CD 0,016–0,112 µg/g ekstra Karadağ [ 18 ]
                  0,09–6,26 µg/g Polonya [ 53 ]
                  0,12 µg/g Finlandiya (kirli bölge) [ 52 ]
                  0,02 µg/g Norveç [ 51 ]
                  0,34–9,81 mg/kg Polonya [ 13 ]
                  0,81–4,43 mg/g Polonya [ 48 ]
                  ortak 0,055 µg/g ekstra Karadağ [ 18 ]
                  0,3 µg/g Finlandiya (kirli bölge) [ 52 ]
                  0,02 µg/g Norveç [ 51 ]
                  Ni 2,18–4,4 µg/g ekstra Karadağ [ 18 ]
                  12,9 mikrogram/g Finlandiya (kirli bölge) [ 52 ]
                  0,4 µg/g Norveç [ 51 ]
                  1,93–2,17 mg/g Polonya [ 48 ]
                  Kurşun 0,47–0,63 µg/g ekstrakt Karadağ [ 18 ]
                  0,0036–0,157 mg/g Polonya [ 53 ]
                  0,00085 mg/g Finlandiya (kirli bölge) [ 52 ]
                  0,0003 mg/g Norveç [ 51 ]
                  3,26–106 mg/g Polonya [ 48 ]
                  4,55–232,1 mg/kg Polonya [ 13 ]
                  Kıdemli 6–14,7 µg/g ekstra Karadağ [ 18 ]
                  0,007 mg/g Norveç [ 51 ]
                  mikrobesin Konsantrasyon Konum Referans
                  cr 0,123–1,11 µg/g ekstra Karadağ [ 18 ]
                  cu 2,99–33,31 µg/g ekstra Karadağ [ 18 ]
                  20.6 µg/g Finlandiya (kirli bölge) [ 52 ]
                  7,3 mikrogram/g Norveç [ 51 ]
                  6,29–8,32 mg/g Polonya [ 48 ]
                  2,17–9,07 mg/kg Polonya [ 13 ]
                  Fe 17,4–25,8 µg/g Karadağ [ 18 ]
                  0,045 mg/g Norveç [ 51 ]
                  59,1–379,4 mg/g Polonya [ 48 ]
                  9,36–410 mg/g Polonya [ 53 ]
                  59,6–108,6 mg/kg Polonya [ 13 ]
                  Mn 251,4–1210 µg/g ekstra Karadağ [ 18 ]
                  38,8–1139 mg/g Polonya [ 53 ]
                  39,9–1124,8 mg/kg Polonya [ 13 ]
                  414 mikrogram/g Finlandiya (kirli bölge) [ 52 ]
                  0,98 mg/g Norveç [ 51 ]
                  59,3–416,9 mg/g Polonya [ 48 ]
                  ay 0,26 µg/g Finlandiya (kirli bölge) [ 52 ]
                  0,05 µg/g Norveç [ 51 ]
                  se 0,19 µg/g Finlandiya (kirli bölge) [ 52 ]
                  0,1 µg/g Norveç [ 51 ]
                  Zn 20,5–31,5 µg/g Karadağ [ 18 ]
                  11,2–207 mg/g Polonya [ 53 ]
                  15,6 mikrogram/g Finlandiya (kirli bölge) [ 52 ]
                  21,7–99,1 mg/g Polonya [ 48 ]
                  0,021 mg/g Norveç [ 51 ]
                  12,2–332,3 mg/kg Polonya [ 13 ]
                  makrobesin Konsantrasyon
                  mg/g
                  Konum Referans
                  K 8.2–17.2 Karadağ [ 18 ]
                  13.3 Sırbistan [ 54 ]
                  7.3 Norveç [ 51 ]
                  3,3–4,99 Polonya [ 13 ]
                  Hayır 0,138–1,262 Karadağ [ 18 ]
                  0.09 Norveç [ 51 ]
                  1.7–2.2 Polonya [ 13 ]
                  Mg 1,5–3,8 Karadağ [ 18 ]
                  0,41 Sırbistan [ 54 ]
                  1.4 Norveç [ 51 ]
                  0,5–1,3 Polonya [ 13 ]
                  P 1.1 Norveç [ 51 ]
                  3.13–3.3 Polonya [ 13 ]
                  CA 1.2–5.9 Karadağ [ 18 ]
                  0,007 Finlandiya (kirli bölge) [ 52 ]
                  2.36 Sırbistan [ 54 ]
                  5.6 Norveç [ 51 ]
                  S 1.7 Norveç [ 51 ]
                  2,94–4 Polonya [ 13 ]
                  Ayrı bir pencerede aç
                  Diyabet için tamamlayıcı bir tedavi olarak VM yapraklarının etkileri, geleneksel tıpta krom içeriği ile ilişkilendirilmiştir. Üç değerlikli krom, insülin bağlayıcı reseptörlerin fosforilasyonunu modüle ederek bir insülin sensitizörü olarak kabul edilir [ 55 , 56 ]. Yine de gösterildiği gibiTablo 7, yapraklardaki krom konsantrasyonu düşüktür; bu nedenle, etkiler tamamen krom içeriğine atfedilemez.

                  Git: 3. Polifenollerin Farmakokinetiği
                  Doğal polifenolik bileşikler genellikle glikosidik formda bulunur ve hidrofilik/lipofilik oran, ana aglikonla karşılaştırıldığında güçlü bir şekilde değiştirilir; monosakkaritlerden türetilen grupların varlığı, farmakokinetik özellikleri derinden değiştirir ve glikosidik bağın türü (O-glikozit, C-glikozit) de önemlidir [27 ] . Genel olarak, doğal polifenolik türevlerin (hem fenol-karboksilik asitler hem de flavonoller, flavonlar, stilbenler, flavanonlar, vb. gibi flavonoidler) oral absorpsiyon için elverişsiz farmakokinetik özelliklere sahip olduğu söylenebilir. Bununla birlikte, gerçekte, işler o kadar basit değildir ve bazı özel yönler göz önüne alındığında, farmakokinetik çalışmaların gerçekleştirilmesi zordur:
                  • kateşinler ve proantosiyanidinler için dimer veya trimer formlarının mevcudiyetinin yanı sıra doğal ekstraktların uygulanması durumunda gıda matrisinin önemi (genel olarak, analitik yöntemler sadece biyoyararlanım çalışmalarında plazmada bulunan monomerleri ölçer) [ 57 ];
                  • aglikonların oluşumuna yol açan enterosit seviyesinde gerçekleşen metabolik deglikosilasyon süreçleri: SGLT1 (sodyum-glikoz yardımcı taşıyıcı 1) tarafından hücre içi yakalama, ardından CBG (sitozolik beta-glukosidaz) etkisi altında hidroliz ), sırasıyla LPH (laktaz-florizin hidrolaz);
                  • bağırsak duvarında (sitokrom P450 izoformu CYP3A4 aracılığıyla) ve karaciğerde (birçok CYP450 izoenzimi, ancak esas olarak CYP3A4) başlangıç ​​aglikonlarının oksitlenmiş metabolitlerini veren biyotransformasyon; daha sonra, ikincisi faz II reaksiyonlarına ve endojen bileşiklerle konjugasyona maruz kalabilir: glukuronidler elde edilir (UGT-üridin-5'-difosfat glukuronil transferazın etkisi altında), SULT yoluyla sülfatlar (kofaktör olarak PAPS ile sülfotransferazlar - fosfo- adenosil-fosfosülfat), sırasıyla COMT (katekol-O-metiltransferaz) aracılığıyla metillenmiş bileşikler, aşağıda gösterildiği gibiFigür 3[ 58 ];
                    Resim, çizim vb. içeren harici bir dosya. Nesne adı: pharmaceutics-15-00016-g003.jpg
                    Figür 3
                    Polifenollerin farmakokinetiği; 1 — bağırsak duvarında emilim ve biyotransformasyon; 2—karaciğer biyotransformasyonu ve duodenumda biliyer eliminasyon ve yeniden emilim yoluyla enterohepatik dolaşım; 3 — saprofitik floranın etkisi altındaki enzimatik süreçler.
                  • glukuronid ve sülfat metabolitleri, duodenumda biliyer eliminasyon ve yeniden emilim nedeniyle enterohepatik dolaşıma girebilir; Halihazırda modifiye edilmiş bileşiklerin bazıları portal damarda enzimatik hidrolize ve yeniden emilmeye maruz kalabilir;
                  • emilmeyen polifenolik fraksiyon, saprofitik floranın etkisi altında karmaşık enzimatik işlemlerden geçtiği kolona ulaşır; yeni oluşan bileşikler absorbe edilebilir ve sistemik dolaşımda bulunur [ 59 ].
                  Sonuç olarak, oral olarak uygulanan doğal polifenolik bileşiklerin azaltılmış biyoyararlanımına rağmen, ince bağırsakta ve kolonda yapısal olarak modifiye edilmiş türevlerin (deglikosile edilmiş, oksitlenmiş, metillenmiş, glukuronidlenmiş, sülfatlanmış) elde edilmesi olasılıkları çoktur ve bunların bir kısmı daha sonra emilebilir. . Ayrıca, bazı farmakolojik etkiler, kalın bağırsağın mikrobiyotasını değiştirerek ve belirli immünofarmakolojik etkileri modüle ederek dolaylı olabilir. Bu nedenle, özellikle uzun süreli tedavilerde (toplam kümülatif dozun yukarıda belirtilen faktörlere bağlı olduğu durumlarda) alınan polifenollerin miktarı ile gözlemlenen farmakolojik etkiler arasında basit bir ilişki bulmak zordur [ 5 , 58 , 59 ,60 ].

                  Ștefănescu ve ark. yaban mersini yapraklarından fenolik bileşiklerin biyoerişilebilirliğini simüle edilmiş in vitro sindirim kullanarak araştırdılar. Araştırma, ekstraktın biyoerişilebilirliğini mikrokapsülleme ile karşılaştırmayı amaçladı. Sonuçlar, mikrokapsüllü püskürtülerek kurutulan ekstraktın solüsyona kıyasla daha iyi bir tepkiye sahip olduğunu gösterdi. Sonuçlar ayrıca tükürük fazının fenolik profil üzerinde minimum etkiye sahip olduğunu, mide ve bağırsak fazlarının ise analiz edilen fenolik bileşiklerde önemli bir azalmaya yol açtığını gösterdi [ 30 ].

                  Git: 4. Farmakolojik Etkinlik
                  Bilimsel literatüre göre, yaban mersini yaprakları anti-diyabetik, hipolipidemik, antibakteriyel, antiviral, antikanserojen ve anti-inflamatuar gibi çoklu terapötik etkilere sahiptir. İn vitro ve preklinik araştırmalar kanıtların çoğunu sağlar; Bildiğimiz kadarıyla, son 10 yılda herhangi bir klinik çalışma yapılmamıştır.

                  Ekstrenin aktivitesi, fitokimyasal profil ile ilişkilidir ve bir yapı-aktivite ilişkisi gözlemlenebilir. Bu ilişki esas olarak antioksidan aktiviteyi etkiler, ancak daha sonra diğer ilgili etkileri de etkileyecektir. Polifenol karboksilik asitler için ise aynı trendde elektron verme yeteneği azaldığı için hidroksifenilasetik asit > hidroksisinamik asit > hidroksibenzoik asit şeklinde sırasıyla antioksidan aktivitenin azaldığı gözlemlenmiştir. Ayrıca hidroksi ve metoksi gruplarının sayısı antioksidan etkileri ile orantılıdır. Flavonoidlerin geniş sınıfı göz önüne alındığında, C2=C3 çift bağının ve C3 pozisyonunda OH-bağlının varlığı, antioksidan aktivite için esastır. Ayrıca, C2=C3 çift bağı diğer etkiler için çok önemli görünmektedir. aldoz-redüktaz inhibisyonu, alfa-amilaz ve alfa-glukosidaz inhibisyonu gibi. Flavonoidlerin glikozilasyonu, yapı-aktivite ilişkisinde önemli bir rol oynar, ancak bazen bireysel farmakokinetik profilleri nedeniyle flavonoidlerin etkileri tahmin edilemez olabilir. Genellikle aglikon karşılık gelen glikozitlerden daha aktiftir; bu, in vitro verilerin in vivo verilerle ilişkilendirilmesiyle fark edilen bir etkidir: glikozitler yalnızca in vivo bir etki üretirken, aglikonlar hem in vitro hem de in vivo etki üretmiştir. Gözlenen bu etkiler göz önüne alındığında, glikozitlerin metabolizasyonunun farmakolojik aktiviteyi oldukça etkilediği sonucuna varılabilir. ancak bazen bireysel farmakokinetik profilleri nedeniyle flavonoidlerin etkileri tahmin edilemez olabilir. Genellikle aglikon karşılık gelen glikozitlerden daha aktiftir; bu, in vitro verilerin in vivo verilerle ilişkilendirilmesiyle fark edilen bir etkidir: glikozitler yalnızca in vivo bir etki üretirken, aglikonlar hem in vitro hem de in vivo etki üretmiştir. Gözlenen bu etkiler göz önüne alındığında, glikozitlerin metabolizasyonunun farmakolojik aktiviteyi oldukça etkilediği sonucuna varılabilir. ancak bazen bireysel farmakokinetik profilleri nedeniyle flavonoidlerin etkileri tahmin edilemez olabilir. Genellikle aglikon karşılık gelen glikozitlerden daha aktiftir; bu, in vitro verilerin in vivo verilerle ilişkilendirilmesiyle fark edilen bir etkidir: glikozitler yalnızca in vivo bir etki üretirken, aglikonlar hem in vitro hem de in vivo etki üretmiştir. Gözlenen bu etkiler göz önüne alındığında, glikozitlerin metabolizasyonunun farmakolojik aktiviteyi oldukça etkilediği sonucuna varılabilir. aglikonlar ise etkiyi hem in vitro hem de in vivo olarak üretti. Gözlenen bu etkiler göz önüne alındığında, glikozitlerin metabolizasyonunun farmakolojik aktiviteyi oldukça etkilediği sonucuna varılabilir. aglikonlar ise etkiyi hem in vitro hem de in vivo olarak üretti. Gözlenen bu etkiler göz önüne alındığında, glikozitlerin metabolizasyonunun farmakolojik aktiviteyi oldukça etkilediği sonucuna varılabilir.61 , 62 ].

                  4.1. Antioksidan Kapasite
                  Antioksidan aktivite , bir bileşiğin süperoksit anyon radikali ( O2 •− ), hidroksil radikali (HO•), hidrojen peroksit (H202 ) gibi reaktif oksijen türlerini (ROS) ve reaktif nitrojen türlerini (RNS) nötralize etme kapasitesidir. ), nitrik oksit (•NO), nitrojen dioksit (NO 2 - ) ve peroksinitrit (OONO -). Bu son derece reaktif moleküller normal hücresel aktivite sırasında ortaya çıkabilir ve normal koşullarda organizmanın süperoksit dismutaz (SOD), glutatyon peroksidaz (GPx) ve katalaz (CAT) gibi antioksidan sistemleri tarafından nötralize edilir. Genellikle, reaktif oksijen sistemlerinin üretimi ile antioksidan sistem arasında bir dengesizlik meydana gelir, bu da oksidatif strese (OS) ve ayrıca, hücresel düzeyde ciddi sonuçları olan lipitlerin ve proteinlerin daha yüksek oksidasyon hızına yol açar [63 ] .

                  Literatüre göre, fenolik bileşikler serbest radikalleri dört farklı kimyasal yolla yakalayabilir: proton eşli elektron transferi, elektron transferi-proton transferi, sıralı proton kaybı elektron transferi ve adükt oluşumu. Reaksiyon ortamı, bu süreçlerin dengede nasıl etkileşime girdiğini belirler [ 64 ].

                  Yaban mersini yapraklarında bulunan çok sayıda polifenolik bileşik nedeniyle, ekstraktlar yüksek antioksidan aktiviteye sahiptir. Tian ve ark. yaban mersini yapraklarının antioksidan etkilerini değerlendirmişler ve sonuçları diğer meyveler, yapraklar ve meyve bitkilerinin dallarından elde edilen özlerle karşılaştırmışlardır. Sonuçları, yaprak ekstraktlarının aynı türden meyve ekstraktlarına kıyasla daha yüksek antioksidan aktiviteye sahip olduğunu ve ayrıca yaban mersini ekstraktlarının test edilen yaprak ekstraktlarından en güçlü antioksidanlar arasında olduğunu gösterdi [65 ] . Teleszko ve ark. benzer bir çalışma yürütmüş ve sonuçları, yaban mersini yaprağı özlerinin diğer özlerle karşılaştırıldığında orta derecede antioksidan etkilere sahip olduğunu göstermiştir [ 23 ].

                  4.2. Antimikrobiyal etkinlik
                  Doğal bileşikler, antibakteriyel aktiviteye sahip umut verici maddeler olarak kabul edilir. Bakterilerin hücre duvarlarına bağlanmasının engellenmesi (antiadezyon etkisi), liposakkarit katmanlarının parçalanması (dış zar hasarı), sitoplazmatik fosfolipid çift tabakasının yıkımı (hücre duvarı hasarı) ve metal iyonlarının kompleksleşmesi gibi çok sayıda etki mekanizması önerilmiştir. [ 17]. Doğrudan etkilerinin yanı sıra, doğal bileşikler, allopatik antibiyotik ilaçları ile sinerji içinde hareket edebilirler; bu etkileşim, doğal bileşikler veya ekstraktlar ile birleştirildiğinde antibiyotiğin minimum inhibitör konsantrasyonunun azalmasıyla kanıtlanmıştır. Sinerjistik etkiler, bazı doğal bileşiklerin (örneğin, polifenoller) bakteriyel membran geçirgenliğini artırma, böylece antibiyotiklerin hücresel girişini kolaylaştırma kabiliyetinde yatar [ 17 , 66 ]. Ayrıca, bu kombinasyon tedavisi antibakteriyel direnç gelişimini azaltabilir [ 66 ].

                  Gram-negatif bakteri suşları, antibiyotiğin etki alanına ulaşmasını yavaşlatan, zarlarının yapısından dolayı genellikle gram-pozitif bakterilere kıyasla daha dirençlidir [ 67 ].

                  Tian ve ark. VM ekstraktlarının Staphylococcus aureus , Bacillus cereus , Listeria monocytogenes , Escherichia coli ve Salmonella enterica sv üzerindeki antibakteriyel etkilerini değerlendirdi. Typhimurium . Staphylococcus aureus ve E. coli'de inhibitör aktivite gözlenmedi ve ayrıca Bacillus cereus'a karşı zayıf etkinlik kaydedildi. Ancak, Salmonella enterica sv'ye karşı orta düzeyde etkililik fark edildi . Typhimurium [ 65]. Yazarlar ayrıca, 50S ribozomal alt biriminin bir bölgesine bağlanarak protein sentezini inhibe eden bir oksazolidinon türevi olan linezolid ile sinerjistik aktiviteler gösterdiler. Hücre duvarı sentezini inhibe eden bir trisiklik glikopeptid olan vankomisin ile daha zayıf bir sinerjistik etki kaydedilmiştir. Ștefănescu ve ark. VM ekstraktlarının farklı bakteri suşları üzerindeki etkilerini de değerlendirdi (Tablo 8). Tian ve diğerleri tarafından elde edilen sonuçların aksine, sonuçları S. aureus üzerinde iyi bir inhibitör etki gösterdi . Her iki araştırma makalesinin metodolojisi incelendiğinde, özütlerin kimyasal profilinin tamamen farklı olduğu ve ayrıca farklı suşların kullanıldığı görülebilir. Bu nedenle, sonuçlar farklı araştırma metodolojisi ile açıklanabilir. Araştırma projelerinden birinde kurutulmuş bitkisel droglardan ekstrakt elde edilirken, diğerinde taze droglardan ekstrakt elde edilmiştir. Taze ilaç için asitleştirilmiş sulu etanol kullanıldı (etanol:su:asetik asit, 70:30:1, v / v / v), kurutulmuş ilaç için %40 etanol kullanıldı. Rhodococcus equi için, VM ekstraktlarının antibakteriyel aktivitesi, bakterisidal aminoglikozit Streptomisin'inkine benzerdi. Tablo 8


                  VM yaprak özlerinin antibakteriyel ve antifungal aktivitesi.
                  Gram pozitif
                  Bacillus cereus + [ 65 ]
                  Staphylococcus aureus
                  ATCC 49444
                  0,06–0,12 [ 29 ]
                  ATCC 29213 1.5 [ 17 ]
                  klinik zorlanma 0,75
                  + [ 65 ]
                  ATCC 25923 + [ 68 ]
                  yara bezleri 63 [ 54 ]
                  ATCC 6538 63
                  Stafilokok
                  epidermidis
                  [ 54 ]
                  yara bezleri 15.75
                  ATCC 12228 15.75
                  Streptokok pyogenes
                  ATCC 19615 31.5 [ 54 ]
                  yara bezleri 31.5
                  Enterococcus faecalis
                  ATCC 29212
                  0,24–0,48 [ 29 ]
                  klinik izolat 20–40 [ 21 ]
                  Propionibacterium akne
                  ATCC 11827 126 [ 54 ]
                  R. eş.
                  ATCC 6939
                  0.12 [ 29 ]
                  Listeria monocytogenes + [ 65 ]
                  gram negatif
                  E. coli
                  ATCC 25922
                  0,48–0,96 [ 29 ]
                  + [ 68 ]
                  klinik izolat 40 [ 21 ]
                  + [ 65 ]
                  K. pneumoniae
                  DSMZ 2026
                  0,24–0,48 [ 29 ]
                  ATCC 10031 126 [ 54 ]
                  yara bezleri 126
                  ATCC 700603 + [ 68 ]
                  P. aeruginosa
                  ATCC 27853
                  0,48 [ 29 ]
                  + [ 68 ]
                  ATCC 9027 31.5 [ 54 ]
                  yara bezleri 31.5
                  Salmonella enterica + [ 65 ]
                  Acinetobacter boumanii
                  ATCC 196060 63 [ 54 ]
                  Acinetobacter sp.
                  yara bezleri 252 [ 54 ]
                  Proteus mirabilis
                  ATCC 12453 31.5 [ 54 ]
                  yara bezleri 63
                  Proteus vulgaris
                  klinik izolatı
                  20 [ 21 ]
                  ATCC 6380 + [ 68 ]
                  mantarlar
                  Candida albicans
                  ATCC 10231
                  250 [ 29 ]
                  Candida zeylanoides
                  ATCC 20367
                  62,5–125 [ 29 ]
                  Candida parapsilosis
                  ATCC 22019
                  62.5 [ 29 ]
                  Ayrı bir pencerede aç
                  + pozitif aktivite, ancak belirlenmiş MİK yok.

                  Louis Rice en sorunlu patojenleri "ESKAPE" olarak adlarından sonra kısaltmıştır: Enterococcus faecium, Staphylococcus aureus, Klebsiella pneumoniae, Acinetobacter baumanni, Pseudomonas aeruginosa ve Enterobacter türleri [ 69 ]. Bu bakteri suşları çoğu nozokomiyal enfeksiyondan sorumludur ve farklı antibiyotiklere dirençleri oldukça endişe vericidir. Da gösterildiği gibiTablo 8, farklı araştırmalar Vaccinium myrtillus yaprak ekstraktının altı "ESKAPE" patojeninden dördü üzerinde antibakteriyel aktivitesini göstermiştir . Ancak, bu bulgular in vitro gösterildi; bu nedenle, geçerli araştırma elde etmek için araştırma preklinik ve klinik çalışmalarda genişletilmelidir.

                  Aflatoksinler, Aspergillus flavus ve A. parasiticus'un metabolik ürünleri olan mikotoksinlerdir . Bu aflatoksinlere akut maruz kalma mide bulantısı, kusma, karın ağrısı ve bazen kasılmalara neden olur. Kronik maruz kalma genellikle hepatotoksisite ve immünotoksisite ile sonuçlanır [ 70 ].

                  Vamvakas ve ark. Aspergillus flavus tarafından aflatoksin sentezi üzerinde metanolik ve sulu ekstraktların etkilerini değerlendirmişlerdir . Sonuçları, sulu ekstraktların aflatoksin sentezini tamamen inhibe ettiğini gösterir, bu da yaban mersini yaprağı ekstraktlarının gıda katkı maddeleri olarak potansiyel rolünü düşündürür [ 71 ].

                  4.3. Metabolik Modülasyon
                  Diyabet, lipid ve protein metabolizmasının yanı sıra glikoz metabolizmasındaki dengesizlik ile karakterize metabolik bir hastalıktır. Tip 2 diyabet, glikoz direnci ve β-pankreatik hücrelerin göreceli salgı eksikliği ile ilişkilidir. Tip 2 diyabet prevalansı endişe verici bir hızla artıyor. Kontrolsüz hiperglisemi, poliol ve hekzosamin yolu gibi çeşitli yolların aktivasyonuna yol açar ve ayrıca gelişmiş glikasyon son ürünlerinin oluşumuna, protein kinaz C'nin aktivasyonuna ve reaktif oksijen türlerinin birikmesine yol açarak diyabete özgü komplikasyonlara neden olur. retinopati, nefropati ve nöropati [ 72 ].

                  Tedavinin temel amacı, glisemik seviyeleri normal sınırlar içinde tutmak ve uzun vadeli komplikasyonları önlemektir. Hastalığın başlangıcında, hastalığın ilerlemesini önemli ölçüde etkileyebileceğinden, bir yaşam tarzı müdahalesi gereklidir [ 73 ].

                  Farmakolojik tedavi ana tedavi olmaya devam etse de, bitkisel ilaçlar diyabet yönetiminde önemli bir rol oynamaktadır çünkü doğal bileşiklerle tedavi takviyesi daha iyi glisemik kontrol ve diyabete özgü semptom ve komplikasyonların iyileşmesi ile sonuçlanmaktadır. İstenen durum, hastalığın başlangıcında bitkisel tedavinin önerildiği ve yaşam tarzı müdahalesiyle birleştirildiği zamandır.

                  Yaban mersini yaprakları yüzyıllardır geleneksel tıpta diyabet için kullanıldığından ve fitoterapi kitaplarında antidiyabetik bitkisel ilaçlar olarak sınıflandırıldığından, ekstraktlarının etkilerini değerlendirmek ve olası etki mekanizmalarını açıklamak için çeşitli araştırmalar yapılmıştır, ancak son zamanlarda yapılan araştırmalar bu etkiler azdır.

                  Alfa-amilaz, tükürük bezleri ve pankreas tarafından salgılanan ve polisakkaritleri gastrointestinal kanalda daha kısa oligosakkaritlere hidrolize eden bir enzimdir. Alfa-glukosidaz, disakkaritleri, yemek sonrası hipergliseminin yükselmesinden sorumlu olan glikoza hidrolize eden bir karbonhidrat hidrolazdır. Diyabet tedavisi için onaylanmış üç sentetik α-glukosidaz inhibitörü vardır: akarboz, vogliboz ve miglitol. Ancak yan etkileri (şişkinlik, ishal, gaz, mide-bağırsak rahatsızlıkları) nedeniyle diyabet tedavisinde nadiren kullanılmaktadırlar [ 74] .]. Bu gastrointestinal yan etkiler, sindirilmemiş karbonhidratların fermantasyonundan kaynaklanır. Etkileyici sayıda rapor, doğal bileşiklerin bu enzimler üzerinde güçlü inhibisyon aktivitesine sahip olduğunu göstermiştir. Farklı flavonoidler, tanenler, kateşinler ve polifenol karboksilik asitler, a-amilaz ve a-glukozidazı aktif olarak inhibe edebilir [ 74 , 75 , 76 ]. İlginç bir şekilde, enzim inhibitörleri olarak kullanılan bitki özlerinin gastrointestinal yan etkileri daha az sıklıkta görülür ve toplam özütteki mevcut bileşiklerin bu yan etkilerin oluşumunu baskılayabildiğini düşünüyoruz. Örneğin tanenler, büzücü etkileri nedeniyle spesifik olmayan ishalin tedavisinde yüzyıllardır kullanılmaktadır [ 77]. Bu etki, güçlü a-amilaz ve a-glukosidaz aktivitesi ile birleştiğinde daha iyi bir sonuca yol açabilir.

                  Bljajic ve ark. VM yapraklarından test edilen ekstraktların (sulu ve hidroetanollü) mükemmel bir a-glukosidaz inhibe etme kapasitesine sahip olduğunu ve en yüksek inhibisyonun hidroetanolik ekstrakt için kaydedildiğini bildirdi. Aynı yazarlar, test edilen ekstraktların a-amilaz üzerinde gözlenebilir herhangi bir etki göstermediğini bildirmiştir [ 33 ]. Ancak, Takacs ve ark. hem a-amilaz hem de a-glukosidaz inhibisyon deneyleri için benzer sonuçlar bildirdi. Flavan-3-ollerin ayrıca a-amilaz ve a-glukozidazı güçlü bir şekilde inhibe ettiği rapor edilmiştir [ 78 ].

                  Bir sıçan hayvan modelinde, VM yapraklarının sulu ekstraktının, nişasta tüketimini takiben kan glukozundaki artışı azaltmadaki etkinliği, hem obez sıçanlarda hem de prediyabet veya streptozosin kaynaklı diyabetlilerde gözlendi; ekstraktın etkinliği bununla karşılaştırılabilir. akarboz [ 37 ].

                  İnsan hepatokarsinom hücre dizisi (Hep G2), kültürde insan hepatositleri ile ortak özelliklere sahip olması nedeniyle biyokimyasal çalışmalarda sıklıkla kullanılmaktadır. Bljajic ve ark. yaban mersini yaprağı ekstrelerinin Hep G2 hücrelerinde glikoz kaynaklı oksidatif stres üzerindeki etkisini araştırdı ve sonuçlar, sulu ekstraktların GSH seviyelerini eski haline getirebildiğini gösterdi [33 ] . Daha önce Bölüm 4.1'de VM yaprak özlerinin antioksidan etkilerini tartışmıştık .

                  Sidorov ve ark. yaban mersini yaprakları ve Phaseolus vulgaris tohum özlerinin diyabetik fareler üzerindeki etkisini karşılaştırdı . Bununla birlikte, özler içme suyuna katıldığı için dozlama metodolojisi belirsizdir [ 79 ].

                  Önceki çalışmamızda, Vaccinium myrtillus yapraklarının diyabetik sıçanlarda glikoz seviyesini düşürme yeteneğine sahip olduğunu göstermiştik [ 80 ]. Ek olarak, VM yaprak özleri ile oral tedavi, sekiz haftalık tedaviden sonra insülin sekresyonunu arttırdı. Ekstraktların bir sekretagog etkisi olduğunu ve/veya beta hücrelerinin işlevini eski haline getirebileceğini varsaydık. VM yapraklarında daha büyük miktarlarda bulunan dört flavonoid -myricetin, quercetin 3-O-rutinoside, quercetin 3-O-galaktoside ve quercetin- hepsi insülin sekresyonunu modüle eder [81 , 82 , 83 ] . Ayrıca, klorojenik asit, AMP-kinaz [ 84 ] aktive ederek iskelet kasında glikoz alımını uyarır ve diğer fenolik asitler de glikoz alımını uyarır [73 ].

                  Birkaç çalışma, diğer bitkilerin yanı sıra yaban mersini yaprakları içeren çok bitkili formüllerin antihiperglisemik potansiyelini araştırmıştır [ 9 , 17 , 37 ]. Bu çalışmaların sınırlamaları, gözlemlenen olası etkilerin, çok sayıda bileşik ve formülasyondaki bileşikler arasındaki ve aynı zamanda absorpsiyon, dağılım ve metabolizasyon sırasındaki öngörülemeyen etkileşimler nedeniyle yorumlanmasının zor olmasıdır.

                  Ek olarak, daha önce araştırma projelerimizden birinde kanıtladığımız gibi, VM yaprak özlerinin antihiperglisemik etkileri diyabetik farelerde katarakt gelişimini önleyebilir. Klorojenik asidin, poliol yolunu katalize eden enzim olan aldoz redüktaz üzerindeki inhibisyon aktivitesi göz önüne alındığında, glikozun ozmotik özelliklere sahip bir poliol olan sorbitole dönüşmesinin, antikataraktojenik etkiyi açıklayan bir etki mekanizması olduğunu varsayabiliriz [ 80 , 85 ].

                  Buna göre, yaban mersini yaprağı özleri, lipid profilini olumlu yönde etkileyebilir ve karaciğer bozukluğu ve nefropati gibi diğer diyabetik komplikasyonların başlamasını geciktirebilir [ 86 ].

                  Zagayko ve ark. yaban mersini yaprağı özleri ile 3 haftalık tedavinin obez hamsterler üzerindeki etkisini değerlendirdi. Çalışma, yaban mersini yaprakları ile tedavi edilen grupta ağırlıkta bir azalma gözlemlendiği ve ayrıca visseral yağ kütlesi ve serum lipid profilinin doza bağımlı bir şekilde azaldığı sonucuna varmıştır [22 ] .

                  4.4. Dermatolojik Etkiler
                  Doğal fenoliklerin kozmesötik formülasyonlara dahil edilmesi, kozmetik endüstrisindeki birçok araştırmacıyı ilgilendirmektedir. Tüketicilerin kozmetikte aktif içerik olarak doğal içeriklere yönelik beklentileri, bu alandaki doymamış yenilik ihtiyacıyla birlikte artmaktadır.

                  Tadic ve ark. %6 VM özü ve %6 yaban mersini çekirdeği yağı içeren bir kremin sağlıklı gönüllülerin cildi üzerindeki etkilerini değerlendirdi ve sonuçlar, yaban mersini yaprağı özü içeren kremin, yalnızca tedavi edilen grupla karşılaştırıldığında cildin hidrasyonunu önemli ölçüde iyileştirdiğini gösterdi. aktif maddeler içermeyen baz ile [ 20 ].

                  Yaban mersini yaprağı özleri kullanılarak yapılan in vitro ve in vivo çalışmaların sonuçları, bu bölümde gösterildiği gibi oldukça cesaret vericidir, ancak henüz klinik çalışmalarla desteklenmemiştir. Bireysel bileşikler için farmakokinetik çalışmalar bilimsel literatürde yaygın olarak bulunmasına rağmen, ekstraktların terapötik dozunu belirlemek için ekstraktlar için farmakokinetik çalışmalar çok önemlidir. Diyabet tedavisinde VM yaprak ekstraktlarının kullanımı ile ilgili olarak, diyabetli kişilerde ilaçların farmakokinetiğini ve farmakodinamiğini değiştirdiği kanıtlanmış olduğundan, diyabetli hastalarda da farmakokinetik çalışmalar yapılmalıdır. Diyabetik deneklerde ilaçların emilimi, değiştirilmiş gastrik boşalma süresinden etkilenir,87 ]. Dağılım, değişen protein bağlanması ve dağılım hacmindeki kayma nedeniyle değiştirilir. Metabolizma, çeşitli CYP'lerin diferansiyel ekspresyonundan etkilenir [ 88 ]. Eliminasyon oranı, kronik böbrek hastalıklarında da modifiye edilmiştir [ 89 ]. Ek olarak, farmakokinetik ve farmakodinamik etkileşimleri içeren bitki-ilaç etkileşimlerinin değerlendirilmesi hala bilinmemektedir. Tüm bu cevaplanmamış sorular, gelecekteki araştırmalar için farklı fırsatlar sunmaktadır.

                  Git:

                  5. Güvenlik Değerlendirmesi
                  Yaban mersini yaprakları kendi başına toksik bileşikler içermez, ancak tanen içeriği nedeniyle tanenler kabızlığa neden olabileceğinden önlemler alınmalıdır. Tanenlerin proteinler ve proteazlar (glikoproteinler, bağırsak bakteriyel enzimleri) ile kompleks oluşturma kapasitesi nedeniyle, tanenler besinlerin emilimini önleyebilir ve ayrıca sindirilebilirliklerini azaltabilir. Demir eksikliğine yol açabilen tanenlerle uzun süreli tedaviler çok önemli bir etkileşime neden olur, yani tanenler demir emilimini engeller. Bu önlemler özellikle çocuklar ve yaşlılar için çok önemlidir [ 1 , 90 ].

                  Git: 6. Önceki Yayınlanmış İncelemeler


                  Meyvelerden elde edilen antosiyaninlerin sağlık yararları birçok incelemenin konusu olmasına rağmen, yakın zamanda yayınlanan literatürde yabanmersini yapraklarına odaklanan çok az sayıda inceleme bulunmuştur.

                  İnceleme, Chehri ve diğerleri tarafından detaylandırılmıştır. Tundis ve ark . farklı Vaccinium türlerinin kimyasal bileşimi ve biyolojik etkilerine odaklanmıştır [ 92 ].

                  Bu gözden geçirmelerle karşılaştırıldığında, mevcut inceleme Vaccinium myrtillus yaprak bileşimi ve etkileri ile ilgili en son gelişmeleri vurguladı. Bugüne kadar bu, son on yılda yayınlanan ve sadece yabanmersini yapraklarına odaklanan tek derlemedir.

                  Yaban mersini yaprakları, birçok ülkenin yabani florasında büyük miktarlarda kolayca bulunur. Bu ekstraktların sunduğu çekici faydalara rağmen, yeterince kullanılmamakta ve yeni keşfedilen bazı bitkisel ilaçların gölgesi altında bulunmaktadır. Kanıta dayalı tıbbın önemi göz önüne alındığında, farmakokinetik ve farmakodinamik profili değerlendirmek için araştırma döngüsünü kapatmak için klinik çalışmalar zorunludur. Daha sonra, uygulamada tekrarlanabilir bir terapötik etkinlik ve güvenlik elde etmek için terapötik olarak aktif bileşiklerdeki standardize edilmiş ekstraktlar kullanılabilir.

                  Git:

                  7. Sonuçlar
                  Bu inceleme, Vaccinium myrtillus yapraklarının fitokimyası ve farmakolojik etkileri ile ilgili mevcut en son bilimsel raporlardan gelen bilgileri birleştirdi. Şaşırtıcı bir şekilde, son 10 yılda Vaccinium myrtillus yapraklarının bileşimi ve farmakolojik etkileri hakkında az sayıda makale yayınlandı çünkü önceki çalışmaların çoğu çoğunlukla meyvelere odaklanmıştı.

                  Bu makale, araştırmacıların yaban mersini yapraklarına olan ilgisinin son on yılda önemli ölçüde azaldığını ve birçok soruyu yanıtsız bıraktığını vurgulamaktadır.

                  Git:

                  Kısaltmalar
                  VM— Vaccinium myrtillus , GAE—gallik asit eşdeğerleri, TPC—toplam polifenolik içerik, DW—kuru ağırlık, QE—quercetin eşdeğerleri, FDA—Gıda ve İlaç İdaresi, IRL—Geçici referans seviyesi, SGLT1—sodyum-glikoz yardımcı taşıyıcı 1, CBG—sitosolik beta-glukosidaz, LPH—laktaz-florizin hidrolaz, SULT—sülfotransferazlar, COMT—katekol-O-metiltransferaz, ROS—reaktif oksijen türleri, OS—oksidatif stres, GSH—glutatyon, RNS—reaktif nitrojen türleri, MİK—minimum engelleyici konsantrasyon

                  Git:

                  Finansman Tablosu
                  Bu araştırma herhangi bir dış finansman almamıştır.

                  Git:

                  Yazar Katkıları
                  Kavramsallaştırma: R.Ș.; metodoloji: R.Ş., EL-Z., B.-E.Ő. ve C.-EV; yazma—orijinal taslak hazırlama: R.Ș., EL-Z., B.-E.Ő. ve C.-EV; yazma—inceleme ve düzenleme: R.Ș. ve C.-EV Tüm yazarlar makalenin yayınlanan versiyonunu okumuş ve kabul etmiştir.

                  Git: Kurumsal İnceleme Kurulu Beyanı
                  Uygulanamaz.

                  Git: Bilgilendirilmiş Onam Beyanı
                  Uygulanamaz.

                  Git: Veri Kullanılabilirliği Bildirimi
                  Uygulanamaz.

                  Git: Çıkar çatışmaları
                  Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

                  Git: Dipnotlar

                  Sorumluluk Reddi/Yayıncının Notu: Tüm yayınlarda yer alan ifadeler, görüşler ve veriler yalnızca bireysel yazar(lar)a ve katkıda bulunan(lar)a aittir ve MDPI ve/veya editör(ler)e ait değildir. MDPI ve/veya editör(ler), içerikte atıfta bulunulan herhangi bir fikir, yöntem, talimat veya üründen kaynaklanan kişi veya mal yaralanmalarından sorumluluk kabul etmez.

                  Git: Referanslar

                  1. Evans W. Trease ve Evans'ın Farmakognozisi. 16. baskı Elsevier; Amsterdam, Hollanda: 2009. [ Google Akademik ]
                  2. Avrupa Konseyi . Avrupa Farmakopesi. 10. baskı Cilt 1 Avrupa Konseyi; Strazburg, Fransa: 2019. [ Google Scholar ]
                  3. EMA Bitkisel Tıbbi Ürünler. [(7 Aralık 2022'de erişildi)]. Çevrimiçi olarak erişilebilir: https://www.ema.europa.eu/en/human-r...cinal-products
                  4. Ősz B.-E., Jîtcă G., Ștefănescu R.-E., Pușcaș A., Tero-Vescan A., Vari C.-E. Kafein ve Antioksidan Özellikleri — Her Şey Doz ve Kaynakla İlgili. Int. J. Mol. bilim 2022; 23 :13074. doi: 10.3390/ijms232113074. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  5. Di Lorenzo C., Colombo F., Biella S., Stockley C., Restani P. Polifenoller ve İnsan Sağlığı: Biyoyararlanımın Rolü. Besinler. 2021; 13 :273. doi: 10.3390/nu13010273. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  6. Ștefănescu BE, Szabo K., Mocan A., Crişan G. Beş Ericaceae Türünün Yapraklarından Fenolik Bileşikler ve Bunların İlgili Biyoyararlanım ve Sağlık Faydaları. moleküller. 2019; 24 :2046. doi: 10.3390/moleküller24112046. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  7. Savych A., Marchyshyn S., Mosula L., Bilyk O., Humeniuk I., Davidenko A. Antidiyabetik Bitkisel Karışımın Bitki Bileşenlerindeki Amino Asit İçeriğinin GC-MS ile Analizi. eczane. 2022; 69 :69–76. doi: 10.3897/pharmacia.69.e77251. [ CrossRef ] [ Google Akademik ]
                  8. Savych A., Basaraba R., Muzyka N., Ilashchuk P. Antidiyabetik Bitkisel Karışımın Bitki Bileşenlerindeki Yağ Asidi Bileşim İçeriğinin GC-MS ile Analizi. eczane. 2021; 68 :433–439. doi: 10.3897/pharmacia.68.e66693. [ CrossRef ] [ Google Akademik ]
                  9. Madić V., Petrović A., Jušković M., Jugović D., Djordjević L., Stojanović G., Vasiljević P. Poliherbal Karışım İyileştirir Hiperglisemi, Hiperlipidemi ve Pankreas, Böbrek ve Karaciğerin Histopatolojik Değişikliklerini Bir Sıçan Tip Modelinde 1 Diyabet. J. Ethnopharmacol. 2021; 265 :113210. doi: 10.1016/j.jep.2020.113210. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  10. Madić V., Stojanović-Radić Z., Jušković M., Jugović D., Žabar Popović A., Vasiljević P. Etnofarmakolojide Kullanılan Bitkisel Karışım ve Beş Tıbbi Bitkinin Genotoksik ve Antigenotoksik Potansiyeli. Afr. J.Bot. 2019; 125 :290–297. doi: 10.1016/j.sajb.2019.07.043. [ CrossRef ] [ Google Akademik ]
                  11. Ieri F., Martini S., Innocenti M., Mulinacci N. Vaccinium myrtillus L. ve Vaccinium vitis idaea L.'nin Sıvı Preparatlarında Fenolik Dağılım : Yabanmersini ve Lingonberry'nin Sıvı Preparasyonunun Analizi. fitokimya Anal. 2013; 24 :467–475. doi: 10.1002/pca.2462. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  12. Singleton VL, Orthofer R., Enzimolojide Lamuela-Raventós RM Yöntemleri. Cilt 299. Akademik Basın; Cambridge, MA, ABD: 1999. Toplam Fenollerin ve Diğer Oksidasyon Substratlarının ve Antioksidanların Folin-Ciocalteu Reaktifi Aracılığıyla Analizi; s. 152–178. Oksidanlar ve Antioksidanlar Bölüm A. [ Google Scholar ]
                  13. Kandziora-Ciupa M., Dabioch M., Nadgórska-Socha A. Vaccinium myrtillus L. Biol'de Antioksidan ve Makro- ve Eser Elementlerin Birikiminin Değerlendirilmesi . Elem'i İzleyin. Res. 2021; 200 :4175–4185. doi: 10.1007/s12011-021-02989-4. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  14. Vrancheva R., Ivanov I., Badjakov I., Dincheva I., Georgiev V., Pavlov A. Bulgar Yabanmersinisinde ( Vaccinium myrtillus L.) CR Acad. Bulg. bilim 2021; 74 :1781–1788. doi: 10.7546/CRABS.2021.12.08. [ CrossRef ] [ Google Akademik ]
                  15. Ziemlewska A., Zagórska-Dziok M., Nizioł-Łukaszewska Z. Kozmetik ve Farmasötik Ürünlerde Potansiyel Uygulamaya Sahip Yan Ürünler Olarak Berry Yapraklarının Sitotoksisite ve Antioksidan Özelliklerinin Değerlendirilmesi. bilim 2021 ; 11 :3240. doi: 10.1038/s41598-021-82207-2. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  16. Bujor O.-C., Le Bourvellec C., Volf I., Popa VI, Dufour C. Yaban Mersini ( Vaccinium myrtillus L.) Yaprakları, Sapları ve Meyvelerindeki Fenolik Bileşenlerin Mevsimsel Değişimleri ve Bunların Antioksidan Aktivitesi. Gıda Kimyası 2016; 213 :58–68. doi: 10.1016/j.foodchem.2016.06.042. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  17. Sadowska B., Paszkiewicz M., Podsędek A., Redzynia M., Różalska B. Potansiyel Antistafilokokal Ajanlar Olarak Vaccinium myrtillus Yaprakları ve Frangula Alnus Kabuğundan Türetilmiş Ekstraktlar. Açta Biokim. Pol. 2014; 61 :163–169. doi: 10.18388/abp.2014_1939. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  18. Brasanac-Vukanovic S., Mutic J., Stankovic D., Arsic I., Blagojevic N., Vukasinovic-Pesic V., Tadic V. Karadağ'dan Antioksidan Kaynağı Olarak Yabani Yaban Mersini ( Vaccinium myrtillus L., Ericaceae) Nutrasötiklerin Üretiminde Kullanım İçin. moleküller. 2018; 23 :1864. doi: 10.3390/moleküller23081864. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  19. Kaškonienė V., Bimbiraitė-Survilienė K., Kaškonas P., Tiso N., Česonienė L., Daubaras R., Maruška AS Changes in Biochemical Compounds of Vaccinium myrtillus , Vaccinium vitis-idaea ve Forest Litter Toplanan Çeşitli Kaynaklardan Orman Çeşitleri. Türk. J. Agric. İçin. 2020; 44 :557–566. doi: 10.3906/tar-1912-41. [ CrossRef ] [ Google Akademik ]
                  20. Tadić VM, Nešić I., Martinović M., Rój E., Brašanac-Vukanović S., Maksimović S., Žugić A. Eski Bitki, Yeni Olasılıklar: Topikal Cilt Hazırlığında Yabani Yaban Mersini ( Vaccinium myrtillus L., Ericaceae) . antioksidanlar. 2021; 10 :465. doi: 10.3390/antiox10030465. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  21. Dragana MV, Miroslav RP, Branka BRG, Olgica DS, Sava MV, Ljiljana R.Č. Yabanmersininin ( Vaccinium myrtillus L.) In Vitro Antibakteriyel ve Antioksidan Aktiviteleri. Afr. J. Mikrobiyoloji. Res. 2013; 7 :5130–5136. doi: 10.5897/AJMR2013.2524. [ CrossRef ] [ Google Akademik ]
                  22. Zagayko AL, Kolisnyk TY, Chumak OI, Ruban OA, Koshovyi OM Vaccinium myrtillus Yaprak Tozu Ekstraktının Bir Hamster Modelinde Obezite Karşıtı ve Lipid Düşürücü Özelliklerinin Değerlendirilmesi . J. Temel Klinik. Fizyol. Eczane. 2018; 29 :697–703. doi: 10.1515/jbcpp-2017-0161. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  23. Teleszko M., Wojdyło A. Seçilmiş Yenilebilir Meyveler ve Yaprakları Arasındaki Fenolik Bileşiklerin ve Antioksidan Potansiyelinin Karşılaştırılması. J. İşlev. yiyecekler. 2015; 14 :736–746. doi: 10.1016/j.jff.2015.02.041. [ CrossRef ] [ Google Akademik ]
                  24. Hăncianu M., Gîrd CE İçinde: Farmacognzie. Biyoaktif Maddeler için Bitkisel Ürünler Üretin. Stănescu U., editör. çocuk felci; Bükreş, Romanya: 2020. [ Google Akademik ]
                  25. Tao W., Zhang Y., Shen X., Cao Y., Shi J., Ye X., Chen S. Proantosiyanidinlerin Sağlık Faydalarının Mekanizmasını Yeniden Düşünmek: Absorpsiyon, Metabolizma ve Bağırsak Mikrobiyotası ile Etkileşim. kompr. Rev. Gıda Bilimi Gıda Saf. 2019; 18 :971–985. doi: 10.1111/1541-4337.12444. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  26. Rauf A., Imran M., Abu-Izneid T., Iahtisham-Ul-Haq, Patel S., Pan X., Naz S., Sanches Silva A., Saeed F., Rasul Suleria HA Proanthocyanidins: A Comprehensive Gözden geçirmek. Biyomed. Eczacı. 2019; 116 :108999. doi: 10.1016/j.biopha.2019.108999. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  27. Luca SV, Makovei I., Bujor A., ​​Miron A., Skalicka-Woźniak K., Aprotosoaie AC, Trifan A. Diyet Polifenollerinin Biyoaktivitesi: Metabolitlerin Rolü. kritik Rev. Gıda Bilimi Nutr. 2020; 60 :626–659. doi: 10.1080/10408398.2018.1546669. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  28. Valiñas MA, Lanteri ML, ten Have A., Andreu AB Klorojenik Asit, Antosiyanin ve Flavan-3-Ol Biyosentezi And Patates Yumrularının Etinde ve Derisinde ( Solanum tuberosum Subsp. Andigena) Gıda Kimyası. 2017; 229 :837–846. doi: 10.1016/j.foodchem.2017.02.150. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  29. Ștefănescu B.-E., Călinoiu LF, Ranga F., Fetea F., Mocan A., Vodnar DC, Crișan G. Kuzey-Batı Romanya Yabani Yabanmersinisinin ( Vaccinium myrtillus L.) Kimyasal Bileşimi ve Biyolojik Aktiviteleri ve Lingonberry ( Vaccinium vitis-idaea L.) Yaprakları. antioksidanlar. 2020; 9 :495. doi: 10.3390/antiox9060495. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  30. Ștefănescu BE, Nemes S.-A., Teleky B.-E., Călinoiu LF, Mitrea L., Martău GA, Szabo K., Mihai M., Vodnar DC, Crișan G. Microencapsulation and Bioaccessibility of Phenolic Compounds of Vaccinium Yaprak Özleri. antioksidanlar. 2022; 11 :674. doi: 10.3390/antiox11040674. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  31. Tian Y., Liimatainen J., Alanne A.-L., Lindstedt A., Liu P., Sinkkonen J., Kallio H., Yang B. Farklı Berry Meyvelerinden ve Yapraklarından Asidik Sulu Etanol ile Ekstrakte Edilen Fenolik Bileşikler Bitkiler. Gıda Kimyası 2017; 220 :266–281. doi: 10.1016/j.foodchem.2016.09.145. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  32. Değirmencioğlu N., Gürbüz O., Karatepe GE, Irkin R. Influence of Hot Air Drying on Phenolic Compounds and Antioxidant Capacity of Blueberry ( Vaccinium myrtillus ) Meyvesi ve Yaprağı. J. Uygulama Bot. Gıda Kal. 2017; 90 :15–125. doi: 10.5073/JABFQ.2017.090.014. [ CrossRef ] [ Google Akademik ]
                  33. Bljajić K., Petlevski R., Vujić L., Čačić A., Šoštarić N., Jablan J., Saraiva de Carvalho I., Zovko Končić M. Sulu Kimyasal Bileşim, Antioksidan ve α-Glucosidase-Inhibiting Activitys ve Vaccinium myrtillus Yapraklarının Hidroetanolik Ekstraktları. moleküller. 2017; 22 :703. doi: 10.3390/moleküller22050703. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  34. Stefkov G., Hristovski S., Petreska Stanoeva J., Stefova M., Melovski L., Kulevanova S. Osogovo Mtn., R. Makedonya'da Yaban Mersininin Kaynak Değerlendirmesi ve Ekonomik Potansiyeli ( Vaccinium myrtillus ve Vaccinium uliginosum ). End. Bitkileri Prod. 2014; 61 :145–150. doi: 10.1016/j.indcrop.2014.06.053. [ CrossRef ] [ Google Akademik ]
                  35. Liu P., Lindstedt A., Markkinen N., Sinkkonen J., Suomela J.-P., Yang B. Yaban Mersini ( Vaccinium myrtillus L.) ve Lingonberry ( Vaccinium vitis-idaea L) Yapraklarının Metabolit Profillerinin Karakterizasyonu .) J. Agric. Gıda Kimyası 2014; 62 :12015–12026. doi: 10.1021/jf503521m. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  36. Cyboran S., Oszmiański J., Kleszczyńska H. Yabanmersini Yaprağı Ekstresi ile Biyolojik ve Model Zarların Lipid Fazının Modifikasyonu. Gıda Biyofizi. 2013; 8 :321–333. doi: 10.1007/s11483-013-9309-0. [ CrossRef ] [ Google Akademik ]
                  37. Takács I., Szekeres A., Takács Á., Rakk D., Mézes M., Polyák Á., Lakatos L., Gyémánt G., Csupor D., Kovács KJ, et al. Yabani Çilek, Böğürtlen ve Yaban Mersini Yaprağı Ekstreleri, Prediyabetik ve Diyabetik Farelerde Nişasta Kaynaklı Hiperglisemiyi Hafifletir. Bitki Med. 2020; 86 :790–799. doi: 10.1055/a-1164-8152. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  38. Toomik P., Püssa T., Raal A. Bazı Vaccinium Türlerinin ve Kültivarlarının Hava Kısımlarında Prosiyanidin Tip A- ve -B Trimer İçeriğinin Değişkenliği . Nat. Üretim komün. 2014; 9 :815–816. doi: 10.1177/1934578X1400900621. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  39. Martz F., Jaakola L., Julkunen-Tiitto R., Stark S. Kuzey Avrupa'da Yaban Mersini ( Vaccinium myrtillus ) Yapraklarının Fenolik Bileşimi ve Antioksidan Kapasitesi Yaprak Gelişiminin Ardından ve Çevresel Degradeler Boyunca. J. Chem. ekol. 2010; 36 :1017–1028. doi: 10.1007/s10886-010-9836-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  40. Luca SV, Bujor A., ​​Miron A., Aprotosoaie AC, Skalicka-Woźniak K., Trifan A. Oligomerik Proantosiyanidinlerin Hazırlayıcı Ayrılması ve Biyoaktivitesi. fitokimya Rev. 2020; 19 :1093–1140. doi: 10.1007/s11101-019-09611-5. [ CrossRef ] [ Google Akademik ]
                  41. Nawrot-Hadzik I., Matkowski A., Hadzik J., Dobrowolska-Czopor B., Olchowy C., Dominiak M., Kubasiewicz-Ross P. Proanthocyanidins and Flavan-3-Ols in the Prevention and Treatment of Periodontitis— Antibakteriyel Etkiler. Besinler. 2021; 13 :165. doi: 10.3390/nu13010165. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  42. Hohtola A., Jaakola L., Määttä-Riihinen K., Kärenlampi S. Yabanmersini ( Vaccinium myrtillus L.) Yapraklarında Güneş Radyasyonu ile Flavonoid Biyosentezinin Aktivasyonu. bitki 2004; 218 :721–728. doi: 10.1007/s00425-003-1161-x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  43. Vrancheva R., Ivanov I., Dincheva I., Badjakov I., Pavlov A. Yabani ve Yetiştirilmiş Vaccinium Türlerinin Yapraklarında Triterpenoidler ve Diğer Polar Olmayan Bileşikler. Bitkiler. 2021; 10:94 . doi: 10.3390/plants10010094. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  44. Szakiel A., Pączkowski C., Huttunen S. Finlandiya ve Polonya'dan Bilberry Vaccinium myrtillus'un Karpuzu ve Yapraklarının Triterpenoid İçeriği . J. Agric. Gıda Kimyası 2012; 60 :11839–11849. doi: 10.1021/jf3046895. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  45. Castellano JM, Ramos-Romero S., Perona JS Oleanolik Asit: Ekstraksiyon, Karakterizasyon ve Biyolojik Aktivite. Besinler. 2022; 14 :623. doi: 10.3390/nu14030623. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  46. ​​Bangladeş Vaccinium myrtillus L. Yapraklarından Elde Edilen Uçucu Yağın Botanik Kimyasal Bileşimi ve Biyolojik Aktiviteleri Dergisi [(9 Kasım 2022'de erişildi)]. Çevrimiçi olarak erişilebilir: https://www.banglajol.info/index.php...cle/view/49098
                  47. Morkunas I., Woźniak A., Mai VC, Rucińska-Sobkowiak R., Jeandet P. Biyotik Strese Bitki Tepkisinde Ağır Metallerin Rolü. moleküller. 2018; 23 :2320. doi: 10.3390/moleküller23092320. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  48. Kandziora-Ciupa M., Gospodarek J., Nadgórska-Socha A. Vaccinium myrtillus L. Eur. J için. Res. 2022; 141 :409–419. doi: 10.1007/s10342-022-01446-8. [ CrossRef ] [ Google Akademik ]
                  49. ABD Gıda ve İlaç Dairesi . Gıda, Gıda Gereçleri ve Diyet Takviyelerinde Kurşun. FDA; Silver Spring, MD, ABD: 2020. [ Google Scholar ]
                  50. Amelia T., Bianca-Eugenia O., Amalia M. Substantele Minerale, Factori Esentiali in Nutritie. O Abordare Din Perspective Bio-Chimica ve Farmacologica. Üniversite Basın; Targu Mures, Romanya: 2020. [ Google Akademik ]
                  51. Nordløkken M., Berg T., Flaten TP, Steinnes E. Güney Norveç'teki Doğal Bitki Örtüsünde Temel ve Temel Olmayan Öğeler: Farklı Kaynaklardan Katkı. bilim Toplam Çevre. 2015; 502 :391–399. doi: 10.1016/j.scitotenv.2014.09.038. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  52. Eeva T., Holmström H., Espín S., Sánchez-Virosta P., Klemola T. Bir Cu-Ni Smelter Sitesinde Besin Zincirlerinde Metal Kaynakları Olarak Bilberry Vaccinium myrtillus'un Yaprakları, Meyveleri ve Otçul Larvaları. kimyasfer. 2018; 210 :859–866. doi: 10.1016/j.chemosphere.2018.07.099. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  53. Kandziora-Ciupa M., Ciepał R., Nadgórska-Socha A., Barczyk G. Kirlenmiş ve Kirlenmemiş Alanlarda Vaccinium myrtillus L. Yapraklarda Ağır Metal Birikimi ve Antioksidan Yanıtların Karşılaştırmalı Çalışması . çevre. bilim kirlilik. Res. 2013; 20 :4920–4932. doi: 10.1007/s11356-012-1461-4. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  54. Miljković VM, Nikolić GS, Zvezdanović J., Mihajlov-Krstev T., Arsić BB, Miljković MN Vaccinium myrtillus L' nin Metanol Ekstraktının Fenolik Profili, Mineral İçeriği ve Antibakteriyel Aktivitesi. Not . Bot. Hortik. Agrobot. 2018; 46 :122–127. doi: 10.15835/nbha46110966. [ CrossRef ] [ Google Akademik ]
                  55. Khodavirdipour A., ​​Haddadi F., Keshavarzi S. Chromium Supplementation; Diabetes Mellitus, Hiperlipidemi ve Depresyon ile Müzakere. J. Diyabet Metab. Uyuşmazlık 2020; 19 :585–595. doi: 10.1007/s40200-020-00501-8. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  56. Kooshki F., Tutunchi H., Vajdi M., Karimi A., Niazkar HR, Shoorei H., Pourghassem Gargari B. Diabetes Mellitus'ta Oksidatif Stres Endeksleri Üzerinde Krom Takviyesinin Etkisine Dair Kapsamlı Bir Görüş: Sistematik Bir İnceleme. klinik Tecrübe. Eczane. Fizyol. 2021; 48 :291–309. doi: 10.1111/1440-1681.13462. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  57. Rothwell JA, Urpi-Sarda M., Boto-Ordoñez M., Llorach R., Farran-Codina A., Barupal DK, Neveu V., Manach C., Andres-Lacueva C., Scalbert A. Systematic Analysis of Phenol-Explorer Veritabanını Kullanan Polifenol Metabolomu. Mol. Nutr. Gıda Res. 2016; 60 :203–211. doi: 10.1002/mnfr.201500435. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  58. Khan J., Deb PK, Priya S., Medina KD, Devi R., Walode SG, Rudrapal M. Diyet Flavonoidleri: Antioksidan Etkileriyle Kardiyoprotektif Potansiyel ve Bunların Farmakokinetik, Toksikolojik ve Terapötik Kaygıları. moleküller. 2021; 26 :4021. doi: 10.3390/moleküller26134021. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  59. Murota K., Nakamura Y., Uehara M. Flavonoid Metabolism: The Interaction of Metabolites and Gut Microbiota. Biyosci. Biyoteknoloji biyokimya 2018; 82 :600–610. doi: 10.1080/09168451.2018.1444467. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  60. Hostetler GL, Ralston RA, Schwartz SJ Flavonlar: Gıda Kaynakları, Biyoyararlanım, Metabolizma ve Biyoaktivite. Av. Nutr. 2017; 8 :423–435. doi: 10.3945/an.116.012948. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  61. Chen J., Yang J., Ma L., Li J., Shahzad N., Kim CK Fenolik Asitlerin Metoksi, Fenolik Hidroksil ve Karboksilik Asit Gruplarının Yapı-Antioksidan Aktivite İlişkisi. bilim 2020 ; 10 :2611. doi: 10.1038/s41598-020-59451-z. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  62. Chen L., Teng H., Xie Z., Cao H., Cheang WS, Skalicka-Woniak K., Georgiev MI, Xiao J. Geliştirilmiş Biyoaktiviteye Yönelik Diyet Flavonoidlerinin Değişiklikleri: Yapı-Aktivite İlişkisi Üzerine Bir Güncelleme. kritik Rev. Gıda Bilimi Nutr. 2018; 58 :513–527. doi: 10.1080/10408398.2016.1196334. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  63. Jîtcă G., Ősz BE, Tero-Vescan A., Miklos AP, Rusz C.-M., Bătrînu M.-G., Vari CE Positive Aspects of Oxidative Stress at Different Levels of the Human Body: A Review. antioksidanlar. 2022; 11 :572. doi: 10.3390/antiox11030572. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  64. Olszowy M. Bitkilerden Elde Edilen Polifenolik Bileşiklerin Antioksidan Özelliklerinden Ne Sorumlu? Bitki Fizyol. biyokimya 2019; 144 :135–143. doi: 10.1016/j.plaphy.2019.09.039. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  65. Tian Y., Puganen A., Alakomi H.-L., Uusitupa A., Saarela M., Yang B. Meyvelerin, Yaprakların ve Berry Bitkilerinin Dallarının Sulu Etanol Ekstraktlarının Antioksidatif ve Antibakteriyel Aktiviteleri. Gıda Res. Int. 2018; 106 :291–303. doi: 10.1016/j.foodres.2017.12.071. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  66. Cheesman MJ, Ilanko A., Blonk B., Cock IE Gelişen Yeni Antimikrobiyal Tedaviler: Bitki Ekstraktlarının/Bileşiklerinin Konvansiyonel Antibiyotiklerle Sinerjistik Kombinasyonları Çözüm mü? Eczacılık. Rev. 2017; 11 :57–72. doi: 10.4103/phrev.phrev_21_17. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  67. Breijyeh Z., Jubeh B., Karaman R. Gram-Negatif Bakterilerin Mevcut Antibakteriyel Ajanlara Karşı Direnci ve Çözme Yaklaşımları. moleküller. 2020; 25 :1340. doi: 10.3390/moleküller25061340. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  68. Rotaru LT Teorik Çalışmanın Vaccinium myrtillus Folium (VM-f) Bitki Ekstraktının Antibakteriyel Etkisinin Deneysel Tespiti ile Korelasyonu . Rahip Chim. 2019; 70 :990–992. doi: 10.37358/RC.19.3.7046. [ CrossRef ] [ Google Akademik ]
                  69. Nozokomiyal Patojenlerde Antimikrobiyal Direnç Çalışması için Rice LB Federal Fonu: ESKAPE Yok. J. Bulaş. Dis. 2008; 197 :1079–1081. doi: 10.1086/533452. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  70. Dhakal A., Sbar E. StatPearls. StatPearls Yayıncılık; Treasure Island, FL, ABD: 2022. Aflatoksin Toksisitesi. [ PubMed ] [ Google Akademik ]
                  71. Vamvakas S.-S., Chroni M., Genneos F., Gizeli S. Vaccinium myrtillus L. Dry Leaf Aqueous Extracts Supress Aflatoxins Biosentez by Aspergillus Flavus. Gıda Biyosci. 2021; 39 :100790. doi: 10.1016/j.fbio.2020.100790. [ CrossRef ] [ Google Akademik ]
                  72. Gregg EW, Sattar N., Ali MK Diyabet Komplikasyonlarının Değişen Yüzü. Lancet Diyabet Endokrinol. 2016; 4 :537–547. doi: 10.1016/S2213-8587(16)30010-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  73. Bahadoran Z., Mirmiran P., Azizi F. Diyabet Yönetiminde Potansiyel Nutrasötikler Olarak Diyet Polifenolleri: Bir Gözden Geçirme. J. Diyabet Metab. Uyuşmazlık 2013; 12:43 . doi: 10.1186/2251-6581-12-43. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  74. Dirir AM, Daou M., Yousef AF, Yousef LF Tip-2 Diyabet Tedavisinde Potansiyel Adaylar Olarak Bitkilerden Elde Edilen Alfa-Glukosidaz İnhibitörlerinin İncelenmesi. fitokimya Rev. 2022; 21 :1049–1079. doi: 10.1007/s11101-021-09773-1. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  75. Samarakoon DNAW, Uluwaduge DI, Siriwardhene MA Diyabet Tedavisinde Kullanılan Sri Lanka Bitkisel İlaçlarının Etki Mekanizmaları: Bir Gözden Geçirme. J. Entegre Med. 2020; 18 :14–20. doi: 10.1016/j.joim.2019.11.003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  76. Satış Müdürü, Souza PM, Simeoni LA, Magalhães PO, Silveira D. α-Amilaz İnhibitörleri: Bitki Kaynağından Hammadde ve İzole Bileşiklerin İncelenmesi. J. Ecz. eczane bilim 2012; 15 :141–183. doi: 10.18433/J35S3K. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  77. Fraga-Corral M., Otero P., Echave J., Garcia-Oliveira P., Carpena M., Jarboui A., Nuñez-Estevez B., Simal-Gandara J., Prieto MA By-Products of Agri- Tanen Açısından Zengin Kaynaklar Olarak Gıda Endüstrisi: Tanenlerin Biyolojik Faaliyetlerine ve Değer Kazanma Potansiyellerine İlişkin Bir İnceleme. yiyecekler. 2021; 10 :137. doi: 10.3390/foods10010137. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  78. Márquez Campos E., Jakobs L., Simon M.-C. Flavan-3-Ol'lerin Antidiyabetik Etkileri ve Mikrobiyal Metabolitleri. Besinler. 2020; 12 :1592. doi: 10.3390/nu12061592. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  79. Sidorova Y., Shipelin V., Mazo V., Zorin S., Petrov N., Kochetkova A. Diyabetik Sıçanlarda Vaccinium myrtillus L. Yaprak ve Phaseolus vulgaris L. Tohum Kabuğu Ekstrelerinin Hipoglisemik ve Hipolipidemik Etkisi. Beslenme. 2017; 41 :107–112. doi: 10.1016/j.nut.2017.04.010. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  80. Ştefănescu (Braic) R., Vari C., Imre S., Huţanu A., Fogarasi E., Todea T., Groşan A., Eşianu S., Laczkó-Zöld E., Dogaru M. Vaccinium Extracts as Moduulators Deneysel Tip 1 Diyabette. J.Med. Yiyecek. 2018; 21 :1106–1112. doi: 10.1089/jmf.2017.0141. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  81. Zhao Z., Chen Y., Li X., Zhu L., Wang X., Li L., Sun H., Han X., Li J. Myricetin, Tip 2 Diyabet Farelerinin Belirtilerini Giderir ve Bağırsak Mikroflorasını Düzenler . Biyomed. Eczacı. 2022; 153 :113530. doi: 10.1016/j.biopha.2022.113530. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  82. Tip 2 Diyabet ve Komplikasyonlarını Yönetmek için Dhanya R. Quercetin, Çok Hedefli Tedaviye Bir Bakış. Biyomed. Eczacı. 2022; 146 :112560. doi: 10.1016/j.biopha.2021.112560. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  83. Shi G.-J., Li Y., Cao Q.-H., Wu H.-X., Tang X.-Y., Gao X.-H., Yu J.-Q., Chen Z ., Yang Y. Quercetin'in Diyabet ve Komplikasyonlarına Karşı Koruduğuna Dair İn Vitro ve İn Vivo Kanıtlar: Literatürün Sistematik Bir İncelemesi. Biyomed. Eczacı. 2019; 109 :1085–1099. doi: 10.1016/j.biopha.2018.10.130. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  84. Ong KW, Hsu A., Tan BKH Klorojenik Asidin Anti-Diyabetik ve Anti-Lipidemik Etkilerine Ampk Aktivasyonu Aracılık Eder. biyokimya Eczane. 2013; 85 :1341–1351. doi: 10.1016/j.bcp.2013.02.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  85. Alim Z., Kılınç N., Şengül B., Beydemir Ş. Bazı Fenolik Asitlerin Sıçan Böbreği Aldoz Redüktaz Enzimi Üzerindeki İnhibisyon Davranışları: Bir İn Vitro Çalışma. J. Enzim Engelleme. Med. kimya 2017; 32 :277–284. doi: 10.1080/14756366.2016.1250752. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  86. Ștefanescu R., Fülöp E., Demian L., Vari C., Ősz B.-E., Groșan A., Laczko-Zöld E., Chibelean B. Efficacy of Natural Polyphenolic Compounds from Yabanmersini ve Yaban Mersini Metabolizma Üzerinde Sıçanlarda Streptozotosinin Neden Olduğu Değişiklikler. Farmacia. 2022; 70 :658–664. [ Google Akademik ]
                  87. Dostalek M., Akhlaghi F., Puzanovova M. Diabetes Mellitus'un İlaçların Farmakokinetik ve Farmakodinamik Özelliklerine Etkisi. klinik Farmakokinet. 2012; 51 :481–499. doi: 10.1007/BF03261926. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  88. Srinivas NR Streptozotosin ile İndüklenen Diabetes Mellitus (DMIS) ve Alloxan ile İndüklenen Diabetes Mellitus (DMIA) Sıçan Modellerinde Preklinik Farmakokinetik Araştırma Stratejileri: Vaka Çalışmaları ve Perspektifler. Avro. J. İlaç Metab. Farmakokinet. 2015; 40 :1–12. doi: 10.1007/s13318-014-0186-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  89. Stoica MC, Vari CE, Imre S., Vancea S., Dogaru MT, Cara E., Tar D. Kronik Böbrek Hastalığı Olan Hastalarda Oral Olarak Uygulanan Siprofloksasinin Farmakokinetik Parametreleri ile Böbrek Hastalığının Evreleri Arasındaki Korelasyonlar. Farmacia. 2015; 63 :6. [ Google Akademik ]
                  90. Popova A., Mihaylova D. Bitki Bazlı Gıdalarda Antinutrientler: Bir Gözden Geçirme. Biotechnol'ü açın. J.2019 ; 13 :68–76. doi: 10.2174/1874070701913010068. [ CrossRef ] [ Google Akademik ]
                  91. Chehri A., Yarani R., Yousefi Z., Shakouri SK, Ostadrahimi A., Mobasseri M., Araj-Khodaei M. Yaban Mersininin ( Vaccinium myrtillus ) Fitokimyasal ve Farmakolojik Anti-Diyabetik Özellikleri, Gelecekteki Çalışmalar İçin Öneriler. Prim. Bakım Diyabet. 2022; 16 :27–33. doi: 10.1016/j.pcd.2021.12.017. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  92. Tundis R., Tenuta MC, Loizzo MR, Bonesi M., Finetti F., Trabalzini L., Deguin B. Vaccinium Species (Ericaceae): From Chemical Composition to Bio-Functional Activity. Uygulama bilim 2021; 11 :5655. doi: 10.3390/app11125655. [ CrossRef ] [ Google Akademik ]
                  Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                  Yorum yap


                  • #10

                    Antidiyabetik bir tıbbi bitki olarak Vaccinium myrtillus - çağlar boyunca araştırma

                    Bir Helmstädter 1, N Schuster
                    üyelikler yıkılmak üyelik

                    • PMID: 20503920
                    Soyut

                    Yabanmersini yaprakları (Vaccinium myrtillus L.), insülinin keşfinden önce bitki kaynaklı en sık kullanılan antidiyabetik ilaçlardan biriydi. Geçen yüzyıl boyunca, bu bitki ve özleri ile birçok hayvansal, klinik ve fitokimyasal çalışma yapılmıştır ve burada özetlenmiştir. Genel olarak, sonuçların aşağı yukarı hayal kırıklığı yarattığı ve bazen günümüze kadar tavsiye edilen şeker hastalığına karşı yaban mersini yapraklarının geleneksel kullanımını destekleyemediği sonucuna varılmalıdır.
                    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                    Yorum yap


                    • #11

                      Yaban mersini ( Vaccinium myrtillus L.) meyve gelişimi sırasında şeker metabolizmasına ilişkin içgörüler

                      Amos Samkumar , 1 Katja Karppinen , 1 Binita Dhakal , 1 Inger Martinussen , 2 ve Laura Jaakola 1 , 2
                      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                      1 Arktik ve Deniz Biyolojisi Bölümü, UiT Norveç Arktik Üniversitesi, Tromsø Norveç
                      2 Gıda Üretimi ve Toplum Bölümü, Norveç Biyoekonomi Araştırma Enstitüsü, Ås Norveç
                      Amos Samkumar, E-posta: on.tiu@ramukmerp.s.soma .
                      Sorumlu yazar.
                      *
                      Yazışma
                      Amos Samkumar, Arktik ve Deniz Biyolojisi Bölümü, UiT Norveç Arktik Üniversitesi, Tromsø, Norveç.
                      E-posta: on.tiu@ramukmerp.s.soma

                      İlişkili Veriler
                      Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
                      Git:

                      Soyut
                      Yaban mersini meyvesi, antosiyaninlerin en iyi doğal kaynaklarından biri olarak kabul edilir ve sağlığa yararlı bileşikleri için geniş çapta araştırılır. Antosiyaninlerin yanı sıra, tane kalitesini belirleyen en önemli özelliklerden biri, olgunlaşan meyveye tatlılık ve tat veren şekerlerin birikmesidir. Bu çalışmada, yaban mersininde invertazlar (INV'ler), hekzokinazlar (HK'ler), fruktokinazlar (FK'ler), sükroz sentazlar (SS'ler), sükroz fosfat sentazlar (SPS'ler) ve sükroz fosfat fosfatazlar dahil olmak üzere şeker metabolizmasıyla ilgili 25 gen tanımladık. SPP'ler). Sonuçlar, tanımlanmış genlerin izoformlarının, meyve gelişimi sırasında farklı şekilde ifade edildiğini ve bu da özelleşmiş işlevleri öne sürdüğünü göstermektedir. En yüksek şeker içeriği, düşük sükroz miktarının eşlik ettiği fruktoz ve glikozun hakim olduğu olgun meyvelerde bulundu. Meyve gelişimi ve olgunlaşması sırasındaki ilgili enzim aktiviteleri, şeker birikiminin moleküler mekanizmasını anlamak için daha fazla analiz edildi. INV'lerin hücre duvarı ve vakuoldeki aktivitesi olgun meyvelere doğru arttı. Nişasta metabolizmasında yer alan amilaz aktivitesi, olgunlaşmamış meyvelerde tespit edilmedi, ancak olgun meyvelerde bulundu. Sükroz yeniden sentezleyen SS enzim aktivitesi, erken olgunlaşma üzerine tespit edildi ve olgun meyvelerde en yüksek aktiviteye sahipti. İlginç bir şekilde, transkriptom verilerimiz, kırmızı ve mavi ışıkla tamamlayıcı ışınlamanın, α- ve β-amilazlar dahil olmak üzere şeker metabolizmasıyla ilgili birkaç genin yukarı regülasyonunu tetiklediğini gösterdi. Ayrıca sükroz, galaktoz ve şeker-alkol metabolizmasında kırmızı ve mavi ışığa verilen yanıtlarda farklı ifade modelleri bulundu.

                      Git: 1.
                      GİRİŞ

                      Karbonhidratlar öncelikle fotosentez sırasında oluşur ve bitki büyümesi ve gelişmesi için ana enerji kaynağıdır (Rolland ve diğerleri, 2006 ). Bunlar, disakkaritler (sükroz), oligosakkaritler (stakioz, rafinoz), polisakkaritler (nişasta) gibi karmaşık moleküller oluşturmak için glikosidik bağlar yoluyla birleştirilebilen monosakkaritlerin (örneğin, glikoz, fruktoz ve galaktoz) basit yapı birimlerinden oluşur. ve türetilmiş şeker-alkoller (Hu ve diğerleri, 2016 ; Moing, 2000 ). Glikoz, fruktoz ve sükroz çözünür şekerler olarak sınıflandırılır. Nişasta, yaprak, kök, gövde ve meyvelerdeki plastidler gibi depolama organlarında biriken ve sadece yedek enerji kaynağı olarak kullanılabilen çözünmeyen bir şekerdir (Cho ve Kang, 2020) .; Wang ve diğerleri, 2013 ). Enerji veren süreçler için öncü olmalarına ek olarak, çözünür şekerler, meyve olgunlaşması sırasında çeşitli bitki metabolik süreçlerinde sinyal molekülleri olarak tanımlanmıştır (Jia ve diğerleri, 2013) ve ayrıca stres ve savunma tepkilerinde yer aldıkları bilinmektedir (Tauzin). & Giardina, 2014 ). Bitki gelişimi sırasında, çözünür şekerler yapraklar gibi fotosentetik kaynak dokulardan meyve, kök ve sürgün dahil olmak üzere alıcı dokulara taşınır (Hammond & White, 2008 ) . Meyvelerde olgunlaşma sırasında biriken şeker miktarı ve türü meyvelerin tatlılığını ve lezzetini iyileştirmekte, dolayısıyla etli meyvelerin kalitesini etkilemektedir (Borsani ve ark., 2009) .). Çoğu etli meyvede, glikoz, fruktoz ve sükroz, şeker içeriğinin büyük bölümünü oluşturur, bunu eser miktarda diğer karbonhidratlar ve şeker-alkoller izler (Dai ve diğerleri, 2016 ) .

                      Karbonhidratlar, kaynak ve lavabo dokuları boyunca farklı taşıyıcı protein aileleri aracılığıyla bölünür ve taşınır (Julius ve diğerleri, 2017 ). Sükroz, meyve gelişimi sırasında floem yoluyla dokulara taşınan başlıca şekerdir. Sükroz taşıyıcıları (SUT) çoğunlukla elek elemanları yoluyla uzun mesafeli taşımada yer alırken, birkaç organel lokalize taşıyıcı da hücreler arası heksoz taşınmasında yer alır (Doidy ve diğerleri, 2012 ) . Meyve dokularında sakaroz, invertazlar (INV'ler) tarafından glikoz ve fruktoz gibi heksozlara hidrolize edilir veya sükroz sentaz (SS) tarafından fruktoz ve UDP-glikoza dönüştürülür (Verma ve diğerleri, 2011 ) . Meyvelerde şeker metabolizmasının şematik bir gösterimi Şekil'de gösterilmiştir. 1. Üç tip INV'nin sükroz hidrolizi ve bozunmasına karıştığı bilinmektedir. Ağırlıklı olarak sitozolde lokalize olan nötr bir invertaz (NINV) ve vakuollerde lokalize çözünür bir INV (VINV) ve hücre duvarında bulunan çözünmez bir form (CWINV) olan iki asit INV'nin bitkide yer aldığı gösterilmiştir. şeker metabolizması (Ruan ve diğerleri, 2010 ; Wan ve diğerleri, 2018). Sükrozdan ayrılan heksozlar, yani hücre dışı boşlukta bulunan glikoz ve fruktoz, ayrıca heksokinaz (HK) ve fruktokinaz (FK) tarafından glikoz-6-fosfat (G6P) ve fruktoz-6-fosfata (F6P) fosforile edilir. sırasıyla. Heksoz fosfat F6P, sitrik asit (TCA) döngüsüne doğru giden enerji veren glikoliz sürecinde öncü olan fosfofruktokinaz (PFK) tarafından fruktoz-1,6-bifosfata dönüştürülür (Granot ve diğerleri, 2013) .). Sükrozun SS tarafından UDP-glikoz ve F6P'ye hidrolizinden parçalanan şeker ürünleri, sükroz fosfat sentaz (SPS) ve sükroz fosfat fosfataz (SPP) tarafından sükroz yeniden sentezinde daha fazla kullanılabilir. "Beyhude sakaroz geri dönüşümü" olarak bilinen sakaroz bozunması ve yeniden sentezi, meyve şekerlerinin birikmesi için kritiktir ve bu nedenle meyve gelişiminde önemli bir rol oynar (Nguyen-Quoc & Foyer, 2001 ) .
                      Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı PPL-174-0-g003.jpg'dir.
                      ŞEKİL 1
                      Meyvelerde şeker metabolizmasının şematik gösterimi (Chen ve diğerleri, 2021'den değiştirilmiştir ) . Galaktoz metabolizmasının bir yolu ve ilgili anahtar enzimler de gösterilmiştir. Bu çalışmada tartışılan anahtar enzimler kırmızı renkle vurgulanmıştır. CWINV, hücre duvarı invertazı; FK, fruktokinaz; GS, galaktinol sentaz; HK, hekzokinaz; NINV, nötr invertaz; PFK, fosfofruktokinaz; PGM, fosfoglukomutaz; RFS, rafinoz sentaz; SPP, sükroz fosfat fosfataz; SPS, sükroz fosfat sentaz; SS, sükroz sentaz; UDPG-PP, UDP-galaktoz pirofosforilaz; UGE, UDP-galaktoz epimeraz; VINV, vakuolar invertaz; α-ami, α-amilaz; α-gal, α-galaktosiltransferaz; β-ami, β-amilaz

                      Meyve kalitesinin birincil belirleyicileri olan şekerler, meyve mahsulleri arasında bileşimleri ve birikimleri bakımından da farklılık gösterir. Elma ve domates gibi klimakterik meyvelerde, meyve olgunlaşmasına doğru kademeli bir şeker içeriği artışı görülebilir (Li ve diğerleri, 2012 ; Nguyen-Quoc & Foyer, 2001 ), oysa üzüm ve domates gibi iklimsel olmayan meyvelerde çileklerde, yalnızca olgunlaşmanın sonraki aşamalarında hızlı bir şeker birikimi rapor edilmiştir (Akšić ve diğerleri, 2019 ; Zhu ve diğerleri, 2017 ). Meyve olgunlaşmasıyla ilgili şeker metabolizması üzerine daha önceki çalışmalar, esas olarak birkaç gen veya izoforma odaklanmıştır ve kapsamlı çalışmalar değildir (Dai ve diğerleri, 2016 ; Zhu ve diğerleri, 2017 ).

                      Lezzet artırmanın yanı sıra, şekerlerin meyve gelişimindeki rolleri çeşitlidir: etli meyvelerde nispeten yalnızca çok düşük miktarlarda bulunan bir diğer önemli heksoz şekeri olan galaktoz, meyve olgunlaşması sırasında hücre duvarı gevşemesinin azaltılmasında önemli bir role sahiptir (Althammer ve ark. ., 2020 ; Brummell, 2006 ). Sükroz metabolizmasının aksine, bitkilerde galaktoz yolu tam olarak anlaşılamamıştır. Galaktoz parçaları genellikle sükroz metabolizmasından türetilen rafinoz tipi oligosakkaritlerin ve stakioz gibi hücre duvarı lokalize polisakkaritlerin üretimi ile ilişkilidir (Gangl & Tenhaken, 2016) .). Ayrıca, sorbitol, miyo-inositol ve galaktinoller gibi şeker alkolleri, a-galaktosiltransferazlar (α-gals) tarafından sentezlenir ve hücresel turgor basıncını koruyarak meyve dokularını dehidrasyondan korumada rol oynadıkları bilinmektedir (Loescher, 1987 ). Bu yollardaki heksoz dönüşüm reaksiyonlarına genellikle UDP-glikoz-pirofosforilaz (UDPG-PP), fosfoglukoizomeraz (PGI) ve fosfoglukomutaz (PGM) enzimleri aracılık eder (Decker & Kleczkowski, 2019 ; Şekil 1). Bazı çalışmalar, olgun meyvelerde çözünmeyen nişasta birikimi ile çözünebilir şeker içeriği arasında bir ilişki olduğunu göstermiştir (Cho & Kang, 2020 ). Bununla birlikte, nişastanın α- ve β-amilaz tarafından parçalanması, meyve gelişiminin sonraki aşamalarında şeker içeriğinde önemli bir artışa da katkıda bulunabilir (Souleyre ve diğerleri, 2004 ) .

                      Yaban mersini ( Vaccinium myrtillus L.), meyve olgunlaşması sırasında biriken yüksek düzeyde antosiyaninler nedeniyle dünya çapında ekonomik önem kazanan Kuzey Avrasya bölgelerine özgü önemli bir yabani meyve türüdür (Pires ve ark., 2020 ) . Vaccinium meyvelerinde , şekerler çoğunlukla pigmentasyon üzerine olgunlaşmanın sonraki aşamalarında birikir. Yaban mersini antosiyanin bileşiklerindeki glikozit kalıntıları çoğunlukla glukozit, galaktosid ve arabinosid türevleridir (Kähkönen ve diğerleri, 2003 ; Zoratti ve diğerleri, 2014 ). Daha önce, kırmızı ve mavi ışık gibi belirli ışık dalga boylarının yaban mersini meyvesinde antosiyanin birikimini iyileştirebileceğini göstermiştik (Samkumar ve diğerleri, 2021) .), ancak şeker metabolizması, taşınması ve sinyalleşmesi hakkında daha fazla bilgi hala eksiktir. Kırmızı ve mavi ışık dalga boylarının domates ve marulda seçici olarak şeker metabolizmasını indüklediği gösterilmiştir (Chen ve diğerleri, 2019 ; Li ve diğerleri, 2017 ).

                      Mevcut çalışma, toplam ve bireysel karbonhidrat içeriğinin ölçülmesi, ilgili gen ekspresyonunun analizi ve enzim aktivite deneyleri yoluyla yabanmersini meyvelerinin geliştirilmesinde şeker biyosentezi ve metabolizmasına ışık tutmayı amaçlamaktadır. Bu çalışma aynı zamanda spektral ışık kalitesinin, özellikle kırmızı ve mavi ışığın etkisinin, ışıkla işlenmiş yabanmersini meyvesi transkriptom veri setimizden tanımlanan şeker metabolizması üzerindeki rolünü vurgulamaktadır. Sonuçlar, yaban mersininde meyve gelişimi sırasında şeker birikimi ve metabolizması hakkında daha derin bir anlayış sağlar. Bu nedenle, bu çalışma Vaccinium meyvelerinin ekonomik değeri ve potansiyel pazarlanabilirliği ile meyve kalitesinin iyileştirilmesine yönelik daha fazla bilgi katmaktadır .

                      Git: 2. MATERYAL VE YÖNTEMLER
                      2.1. Bitki malzemeleri
                      Oulu (65°01'K, 25°28'D), Finlandiya ve Tromsø'daki (69°71'K, 19°41) doğal orman meşcerelerinden dört farklı gelişim aşamasındaki yabani yaban mersini ( V. myrtillus L.) meyveleri toplanmıştır. 'E), Norveç. Gelişim aşamaları, daha önce açıklandığı gibi küçük olgunlaşmamış yeşil meyveler ( S2 ), büyük olgunlaşmamış yeşil meyveler (S3), olgunlaşan mor meyveler (S4) ve tamamen olgun mavi renkli meyvelerdir (S5) . Numuneler, RNA ekstraksiyonu ve şeker içeriği analizleri için kullanılana kadar -80°C'de tutuldu. Enzim ekstraksiyonu için taze meyveler kullanılmıştır. Bir biyolojik kopya için yaklaşık 5-15 çilek birleştirildi ve analizler için en az üç biyolojik kopya kullanıldı.

                      Bu çalışmada kırmızı ve mavi ışıkla işlenmiş yaban mersini meyvelerinden daha önce yayınlanmış transkriptom veri seti kullanılmıştır (Samkumar ve diğerleri, 2021 ). S2 aşamasındaki meyveleri olan yabanmersini çalıları, arktik enlemlerde gün ışığının neredeyse 24 saat olduğu yaz aylarında doğal bir orman meşceresinden toplandı ve S3 aşamasına kadar iklimlendirme için 16°C'de fitotronda benzer ışık koşulları altında birkaç gün tutuldu. meyveler elde edildi. Çalılar daha sonra foto yansıtıcı levhalarla yanlardan kapatılmış ve üstten sürekli olarak 8.0 ve 10.0 μmol m -2 s -1 arasında değişen foton akıcılık oranı ile mavi (460 nm) veya kırmızı (660 nm) ışık dalga boylarıyla ışınlanmış odalara yerleştirildi .. Spesifik ışık dalga boylarına ek olarak, bitkiler tepeden sürekli beyaz ortam ışığı (400-700 nm) aldı. Kontrol yaban mersini çalılarına yalnızca sürekli ortam beyaz ışığı (400-700 nm) verildi. Sıcaklık 16°C'de tutuldu. Meyveler, RNA sıralaması ve transkriptom kitaplıklarının oluşturulması için ışık tedavilerinin başlangıcından 6 gün sonra toplandı. Işık uygulamalarından elde edilen S5 aşamasındaki meyveler,

                      şeker içeriğinin analizi için toplanmıştır.

                      Transkriptomun ham okumaları, NCBI-SRA veri tabanından BioProject ID PRJNA747684'ten alındı. Üst diferansiyel olarak eksprese edilen genler (DEG'ler) analiz edildi ve Blast2GO yazılım paketi kullanılarak KEGG yolu zenginleştirme analizine tabi tutuldu. Şeker metabolik yolları altında sınıflandırılan tüm genler filtrelendi ve daha fazla analiz edildi.

                      2.2. Şeker metabolizması genlerinin tanımlanması
                      CWINV, NINV, VINV, FK, HK, SS, SPP ve SPS'ye karşılık gelen şeker metabolizması enzimlerinin ana gruplarını kodlayan genler, Vaccinium virgatum'un (TSA ID, GGAB00000000.1 ) transkriptom shotgun düzeneği (TSA) dizi veritabanlarından alındı ​​ve V. myrtillus'un transkriptomları (SRA ID'leri, SRX3387852 ve SRX3387853; Bioproject ID, PRJNA747684).

                      2.3. Filogenetik analiz
                      Clustal Omega programı ( https://www.ebi.ac.uk/Tools/msa/clustalo/ ) kullanılarak şeker gen dizilerinin çıkarsanan amino asidinin çoklu dizi hizalamaları yapıldı . Meyve mahsulü türleri boyunca şeker enzim aileleri arasındaki ilişkiyi analiz etmek için hizalanmış diziler için filogenetik analiz yapıldı. Köklenmemiş filogenetik ağaç, MEGA X yazılım paketi (Kumar ve diğerleri, 2018 ) kullanılarak, Poisson tarafından dağıtılan bir modelde önyükleme testi değeri 500 kopyaya ayarlanmış bir maksimum olasılık yöntemi kullanılarak oluşturuldu .

                      2.4. RNA ekstraksiyonu ve qRT-PCR analizi
                      Dondurulmuş meyveler, havan ve tokmak kullanılarak sıvı nitrojen altında ince bir toz haline getirildi. Toplam RNA, üreticinin talimatları izlenerek Spectrum Plant Total RNA kiti (Sigma-Aldrich, St. Louis, MO, ABD) kullanılarak yaklaşık 120 mg doku tozundan izole edildi. Kalıntı DNA, DNase I (Sigma-Aldrich) kullanılarak kolon üzerinde sindirim ile elimine edildi. RNA, bir NanoDrop™ 2000c spektrofotometre (Thermo Fischer Scientific, Waltham, MA, ABD) kullanılarak kalifiye edildi ve miktarı belirlendi. Birinci sarmal cDNA, üreticinin talimatlarına göre Invitrogen Superscript IV ters transkriptaz (Thermo Fisher Scientific) kullanılarak 4 μg toplam RNA'dan sentezlendi.

                      Gerçek zamanlı kantitatif ters transkripsiyon PCR (qRT-PCR) analizi, 15 ul reaksiyon hacminde SsoFast™ EvaGreen supermix (Bio-Rad) kullanılarak CFX96 Real-Time System (Bio-Rad, Hercules, CA, ABD) ile yapıldı. PCR koşulları 30 saniye 95°C, ardından 95°C'de 5 saniye ve 10 saniye 60°C'de 40 döngüdür. Programı, her döngüde 0,5°C'lik artışlarla 65°C ila 95°C arasında değişen bir erime eğrisi analizi izledi. Tüm analizler üç biyolojik kopya ile yapıldı. Sonuçlar CFX connect yazılımı (Bio-Rad) kullanılarak 2 (−ΔΔCq) yöntemi kullanılarak analiz edildi. Bağıl ekspresyon seviyeleri, gliseraldehit-3-fosfat dehidrogenaz ( GAPDH) veya aktin ile normalleştirildi.benzer sonuçlarla. Bu çalışmada kullanılan genler için primer dizileri Tablo S1'de listelenmiştir .

                      2.5. Enzim aktivite deneyleri
                      Daha önce Xie ve diğerleri tarafından açıklanan biraz değiştirilmiş bir ekstraksiyon protokolü. ( 2009 ) enzim aktivite deneyleri için kullanıldı. Tüm tahliller 0-4°C'de gerçekleştirildi ve önceden soğutulmuş şişeler kullanıldı. Yaklaşık 1 g taze öğütülmüş meyve dokusu, 50 mM HEPES-NaOH (pH 7.5), 10 mM MgCl2 , 2.5 mM DTT, 1.0 mM EDTA, %0.05 (v/) içeren 1:8 (w/v) ekstraksiyon tamponu ile ekstre edildi. v) Triton X-100, %0,1 (a/h) BSA, %0,1 (h/h) β-merkaptoetanol ve %2 (a/h) polivinilpolipirolidon (PVPP). Reaksiyon karışımı, 12.000 g'de santrifüjlendi15 dakika Ham ekstrakt, 25 mM HEPES-NaOH (pH 7.5) ve 0.25 mM disodyum-EDTA içeren diyaliz tamponu ile 16 saat boyunca bir selüloz membran (moleküler kesme 14.000 Da; Sigma-Aldrich) kullanılarak diyaliz edildi. Pelet, 10 ml ekstraksiyon tamponu ile iki kez homojenleştirildi ve ardından 3 ml 50 mM HEPES-NaOH (pH 7.5) ve 0.5 mM disodyum-EDTA içinde yeniden süspanse edildi. Pelet ayrıca çözünmeyen CWINV'yi tahlil etmek için PVPP'siz 200 ml ekstraksiyon tamponu (1:40, v/v) ile yıkandı. VINV ve NINV'nin aktivitesi, Lowell ve arkadaşlarına göre ölçüldü. ( 1989 ). Reaksiyon solüsyonu 80 mM K3P04 içeriyordu-asetat (asidik için pH 4.5 ve nötr INV için pH 7.5) 500 mM sükroz ile. 0.3 ml ham enzim ekstraktı numune miktarı, 1 ml reaksiyon hacmindeki reaksiyon solüsyonu ile 37°C'de 40 dakika inkübe edildi. Enzimatik reaksiyon, 600 ul %1 (w/v) 3,5 dinitro salisilik asit (DNS) eklenerek sonlandırıldı ve 5 dakika daha kaynatıldı. Absorbans, bir spektrofotometrede (Smart Spec; Bio-Rad) 540 nm'de okunmuştur. Tüm INV'lerin aktivitesi , taze ağırlıktan (FW) üretilen glikoz miktarı (mmol g -1 h -1 ) olarak ifade edildi.

                      SS ve SPS aktiviteleri, Zhang ve ark. ( 2011 ). Enzim aktiviteleri benzer şekilde ancak substratlar değiştirilerek tahmin edildi; reaksiyon karışımlarında SS için fruktoz ve SPS için F6P. Reaksiyon solüsyonu 0,5 M HEPES-NaOH (pH 7,5), 0,14 M MgCl2'den oluşuyordu., 0,028 M disodyum EDTA, 0,112 M F6P veya 0,084 M fruktoz ve 0,042 M üridin difosfat glukoz (UDP-G). Enzim-reaksiyon solüsyonu karışımı 37°C'de 40 dakika inkübe edildi ve reaksiyon 1,0 M NaOH eklenerek durduruldu. Reaksiyon karışımından kalan F6P, numunelerin 100°C'de 10 dakika kaynatılmasıyla daha da bozuldu. İnkübasyonun ardından karışıma 0,25 ml resorsinol solüsyonu (%0,1 (w/v) etanol içinde) ve 0,75 ml %35 HCl (v/v) ilave edildi ve numuneler tekrar 80°C'de 8 dakika inkübe edildi. . Absorbans değerleri bir spektrofotometrede (Smart Spec; Bio-Rad) 520 nm'de ölçüldü ve üretilen sakaroz, üretilen sakaroz miktarı (mmol g -1 h -1 FW ) olarak ifade edildi.

                      α- ve β-amilaz ile nişasta bozunma aktivitesi, Hagenimana ve ark. ( 1994 ). Reaksiyon karışımı, 0.25 ml 100 mM fosfat tamponu (pH 6.0), 0.25 ml enzim özütü ve 0.5 ml %1 (w/v) nişasta çözeltisinden oluşuyordu. Karışımlar 5 dakika 40°C'de inkübe edildi ve 0.4 M NaOH eklenerek sonlandırıldı. Üretilen indirgeyici şekerler, DNS reaktifi bazlı yöntemle belirlendi (Miller, 1959 ). α-amilaz aktivitesini belirlemek için benzer bir analiz yapıldı, ancak enzim ham ekstraktı, reaksiyonun başlangıcında β-amilazın deaktive edilmesi için 70°C'de 15 dakikada önceden inkübe edildi. β-amilaz aktivitesi, toplam amilaz ve α-amilaz aktivitesindeki farkla belirlendi ve mmol g- 1 cinsinden üretilen maltoz miktarı olarak ifade edildi. h −1 FW. Tüm enzim tahlilleri, dört biyolojik kopya ile yapıldı.

                      2.6. şeker içeriği ölçümü
                      RNA ekstraksiyonu için öğütülen meyve örneklerinin bir kısmı, bir dondurarak kurutucuda (Virtis benchtop-K; SP Scientific, Gardiner, NY, ABD) kurutuldu. 0.1 g'lık kurutulmuş numune tozu, 90 dakika boyunca bir orbital çalkalayıcıda 0.12 g PVPP içeren 12 ml su ile özümlendi. Ekstraktlar 4500 g'de 10 dakika santrifüjlendi ve süpernatan 0.2 μm'lik bir filtre (Merck-Millipore, Darmstadt, Almanya) kullanılarak süzüldü ve şeker içeriği analizi için kullanılana kadar -20°C'de saklandı.

                      Toplam şeker içeriği, Nielsen ( 2010 ) tarafından açıklanan fenol-sülfürik asit yöntemine göre analiz edildi . Absorbans, 490 nm'de okundu ve bilinen konsantrasyonlarla bir glikoz standart eğrisine göre ölçüldü. bireysel çözünür şekerler, bir sükroz/ d -Glukoz/ d -Fruktoz tahlil kiti (R-Biopharm, Darmstadt, Almanya) kullanılarak analiz edildi . Absorbanslar bir spektrofotometre (Smart Spec; Bio-Rad) ile 340 nm'de ölçülmüştür. Her şeker için absorbans farkı, üretici tarafından sağlanan formül kullanılarak hesaplandı. Tüm şeker analizleri en az üç biyolojik kopya ile analiz edildi.

                      2.7. istatistiksel analiz
                      Farklı meyve gelişim aşamalarında gen ekspresyonu, enzim aktiviteleri ve şeker seviyelerindeki önemler, Student t -testi ( P  ≤0.05) kullanılarak analiz edildi. Farklı ışık işlemlerinden elde edilen şeker konsantrasyonları, tek yönlü ANOVA ve ardından Tukey'nin post-hoc testi ile analiz edildi ( P  <0.05). Tüm görselleştirmeler ve istatistiksel analizler, Origin pro yazılımı v2021b (OriginLab Corporation, Northampton, MA, ABD) kullanılarak yapıldı.

                      Git: 3. SONUÇLAR VE TARTIŞMA
                      3.1. yabanmersini meyve gelişimi sırasında şeker içeriği
                      Toplam şeker içeriğinin ölçümü, en yüksek şeker seviyelerinin tamamen olgun S5 meyvelerinde bulunduğunu, ardından S4 meyvelerinin geldiğini, en düşük şeker içeriğinin ise S3 meyvelerinde bulunduğunu gösterdi (Tablo 1). Çileklerle ilgili önceki çalışmalar, yalnızca renk gelişimiyle aynı zamana denk gelen daha sonraki gelişim aşamalarında bir artışla benzer bir çözünür şeker birikimi modeli göstermiştir (Tian ve diğerleri, 2012; Topçu ve diğerleri, 2022 ; Wang ve diğerleri, 2018 ). Kullanılan fenol-sülfürik asit yöntemi tüm şekerleri ölçmesine rağmen, toplam şeker miktarı, ölçülen bireysel çözünür şekerlerin (glikoz, fruktoz ve sükroz) toplam miktarı hesaplanarak doğrulandı.

                      TABLO 1
                      yaban mersini meyve gelişimi sırasında şeker içeriği
                      S2 gün 70,06 ± 0,52 2 78,04 ± 0,77 2 4,57 ± 0,45 1 152,67 ± 1,74 2 135,63 ± 13,45 2
                      S3 35,90 ± 1,54 1 47,29 ± 2,59 1 7,48 ± 1,09 2 90,67 ± 5,22 1 87,56 ± 5,45 1
                      S4 101,11 ± 6,91 3 123,69 ± 9,88 3 7,97 ± 0,76 2 232,77 ± 17,55 3 214,55 ± 27,67 3
                      S5 165,76 ± 8,12 4 227,55 ± 4,34 4 4,55 ± 0,39 1 397,86 ± 12,85 4 333,36 ± 27,56 4
                      Ayrı bir pencerede aç
                      a Veriler, mg g −1 kuru ağırlık (DW)  cinsinden ifade edilir ve üç biyolojik kopyadan elde edilen ortalama ± sd'yi temsil eder. Farklı üst simgeler, Student's t -testi ( P  ≤0.05) kullanılarak önceki gelişim aşamasına kıyasla önemli bir farklılık gösterir .
                      b Toplam şeker içeriği, Sükroz/ d -Glikoz/ d -Fruktoz tahlil kiti kullanılarak ölçülen bireysel çözünebilir şeker içeriğinden hesaplanmıştır .
                      c Toplam şeker içeriği, fenol-sülfürik asit yöntemi kullanılarak ölçüldü.
                      d Meyve gelişim aşamaları: S2, küçük, olgunlaşmamış yeşil meyve; S3, büyük olgunlaşmamış yeşil meyve; S4, olgunlaşan mor meyve; S5, tamamen olgun mavi meyve.
                      Yabanmersini meyvelerinde bireysel çözünür şeker ölçümleri, fruktoz konsantrasyonlarının tüm gelişim evrelerinde glikozdan biraz daha yüksek olduğunu, ancak anlamlı olmamakla birlikte sakaroz konsantrasyonunun diğer iki çözünür şekerden önemli ölçüde daha düşük olduğunu göstermiştir (Tablo 1). Ayrıca, daha önceki çalışmalarda, olgun yaban mersini meyvelerinde baskın şekerin fruktoz olduğu, ardından glikozun geldiği, sükrozun ise nispeten düşük miktarlarda bulunduğu bulunmuştur (Dare ve diğerleri, 2022; Mikulic-Petkovsek ve diğerleri, 2015; Milivojević ve diğerleri ) . diğerleri, 2012 ; Uleberg ve diğerleri, 2012 ). Ayrıca, sonuçlarımız fruktoz ve glikoz seviyelerinin meyve gelişimi sırasında benzer bir eğilim izlediğini göstermiştir. Küçük, olgunlaşmamış yeşil meyvelerde (S2), fruktoz ve glikoz konsantrasyonu sırasıyla 78 ve 70 mg g -1 DW'de ölçüldü , ardından S3 aşamasında yaklaşık iki kat azaldı ve ardından S4 aşamasında yaklaşık 1,5 kat arttı. (Masa 1). Olgun meyvelerin (S5) fruktoz konsantrasyonu 228 mg g -1 DW ve glikoz konsantrasyonu 166 mg g -1 DW idi. Sükroz konsantrasyonu S2 ve S5 evrelerinde 4,6 mg g -1 DW idi, ancak meyve gelişiminin S3 ve S4 evrelerinde biraz daha yüksekti (Tablo 1). Sonuçlarımız, yaban mersini meyvesi gelişimi sırasında fruktoz ve glikoz konsantrasyonlarının antosiyaninlerle birlikte biriktiğini gösteren yakın tarihli bir çalışmayla uyumludur (Dare ve diğerleri, 2022 ) .

                      3.2. Yabanmersinide şeker metabolizması ile ilgili gen ailelerinin tanımlanması ve filogenetik analizi
                      CWINV, VINV, NINV, HK, FK, SPP, SPS ve SS dahil olmak üzere şeker metabolizması enzim ailelerinin üyelerini kodlayan genler, Vaccinium türlerinin mevcut meyve transkriptom veri kümelerinden alınmıştır (Nguyen ve diğerleri, 2018; Samkumar ve diğerleri, 2018 ) . al., 2021 ). Toplamda 25 şeker metabolizması yolu geni tanımlandı; üç CWINV izoformu, iki VINV izoformu, beş NINV izoformu, dört HK izoformu, beş FK izoformu, üç SPS izoformu, iki SPP izoformu ve bir SS izoformu. SRA transkriptom veri kümelerinden alınan karşılık gelen yaban mersini dizileriyle birlikte, şeker metabolizmasıyla ilişkili tüm tanımlanmış Vaccinium dizileri Tablo S2'de sunulmaktadır .

                      NINV'lerin yalnızca sitoplazmada bulunduğuna yaygın olarak inanılmasına rağmen, önceki bir çalışma bunların plastidlerde de bulunabileceğini göstermiştir (Murayama & Handa, 2007 ). Hücre altı lokalizasyon analizimize dayanarak, üç izoformun (NINV1, NINV2 ve NINV4) büyük olasılıkla sitoplazma yerine plastidlerde bulunduğu tahmin edildi (Tablo S2 ) . Başka bir çalışma, sakarozun plastidlerin içine girebileceğini gösterdi, ancak organel içindeki INV'ler tarafından sükroz metabolizması nispeten bilinmiyor (Gerrits ve diğerleri, 2001 ). Tanımlanan yaban mersini CWINV'leri ve VINV'leri sırasıyla hücre duvarında ve vakuolde lokalize edildi (Tablo S2). Oluşturulan filogenetik ağaç, yaban mersini şeker metabolizması genlerinin kimliğinin yanı sıra farklı INV ailelerinin kimliğini açıkça ayrı kuşaklara kümeleyerek doğruladı (Şekil 2). CWINV ve VINV, her ikisinin de asidik INV olduğu düşünüldüğünde, birbirleriyle daha yakın bir ilişki göstermiştir (Roitsch & González, 2004 ). NINV'ler, asidik INV protein ailesinin ekson sayılarındaki değişiklikler nedeniyle ayrı ayrı dallanır (Duan ve diğerleri, 2021 ). HK ve FK, heksozların benzer fosforile edici yapıları nedeniyle birbirine yakın gruplandırılmıştır (Granot ve diğerleri, 2014 ) ve SPS protein ailesinin benzersiz bir S6PP alanına sahip olması nedeniyle SS ve SPS ayrı ayrı dallanmıştır.
                      Resim, çizim vb. içeren harici bir dosya. Nesne adı PPL-174-0-g002.jpg'dir.
                      ŞEKİL 2
                      Yaban mersini şeker metabolizması ile ilgili genlerin filogenetik analizi. Tanımlanan gen izoformları siyah dairelerle belirtilmiştir. Her dalın yanındaki sayılar, 500 kopya için önyükleme tahminlerini temsil eder. 1.1 ölçek çubuğu değeri, bölge başına genetik değişim veya nükleotid ikame miktarını temsil eder. CWINV, hücre duvarı invertazı; FK, fruktokinaz; Fv, Fragaria vesca ; HK, hekzokinaz; Md, Malus × evcil ; NINV, nötr invertaz; Pp, Prunus persica ; SPP, sükroz fosfat fosfataz; SPS, sükroz fosfat sentaz; SS, sükroz sentaz; VINV, vakuolar invertaz; Vm, Vaccinium myrtillus ; Vv, Vitis vinifera

                      3.3. Yabanmersini meyvesi gelişimi sırasında şeker metabolizması genlerinin ifadesi
                      Tanımlanan tüm gen izoformlarının nispi gen ekspresyon seviyeleri, qRT-PCR kullanılarak tane gelişimi sırasında belirlendi. CWINV'nin üç izoformunun hepsinin ekspresyon paternleri birbirinden farklıydı (Şekil 3 A). CWNV1 ifadesi, S3 ve S4 meyvelerinde düşük, ancak olgun meyve aşamasında (S5) biraz daha yüksekken, CWINV2, S3'te S2'ye göre anlamlı dört kat daha yüksek ifade gösterdi. Olgunlaşmanın sonraki aşamalarında (S4 ve S5), CWINV2 ifadesi saptanmadı. CWINV3'ün ifadesi , meyve gelişimi ve olgunlaşma aşamaları boyunca önemli ölçüde değişmedi, S3'te S2'ye göre biraz daha düşükken, S4'te benzer ifade gösterdi ve tamamen olgunlaşmış meyvede ifadesini yine biraz azalttı (Şekil 3 A). CWINV'ler, meyve gibi yutak organı gelişimi sırasında hayati öneme sahiptir ve meyve oluşumunda önemli bir rol oynar (Ruan ve diğerleri, 2010 ), bu, izoformların CWINV2'sinden kanıtlandığı gibi, yaban mersinindeki S3 aşamasının neden meyve gelişimi sırasında kritik olduğunu açıklayabilir (Ruan ve diğerleri, 2010). Figür 3 A). Genel olarak, CWINV'ler, sükroz kaynak dokulardan taşındığında heksozlara bölünmede yer alan anahtar enzimlerdir ve meyvelerde çökme kuvvetini yukarı doğru düzenlerler (Roitsch & González, 2004 ). Sonuçlarımızdan, CWINV'nin farklı şekilde ifade edilen tüm izoformlarının, belirli gelişim aşamalarında farklı işlevlere sahip olabileceği sonucuna varabiliriz. Özellikle CWINV1, çalışmamızda gösterildiği gibi, olgun meyvelerde glikoz ve fruktoz seviyelerini artırmada geç olgunlaşma aşamalarında bir role sahip olabilir (Tablo 1).
                      Resim, çizim vb. içeren harici bir dosya. Nesne adı PPL-174-0-g001.jpg'dir.
                      FİGÜR 3
                      Yabanmersini meyvesi gelişimi sırasında (A) CWINV , (B) VINV ve (C) NINV genlerinin ifadesi . Göreceli gen ekspresyon seviyeleri, qRT-PCR ile ölçüldü ve GAPDH'ye normalleştirildi . Değerler, dört biyolojik kopyanın ortalamasıdır ±  sd . Yıldız işaretleri, Student t -testi (* P  ≤0.05) kullanılarak önceki gelişim aşamasıyla karşılaştırıldığında önemli bir farkı gösterir . S2, küçük olgunlaşmamış yeşil meyve; S3, büyük olgunlaşmamış yeşil meyve; S4, olgunlaşan mor meyve; S5, tamamen olgun mavi meyve

                      Ayrıca, her iki VINV'nin ifadesi, meyve olgunlaşmasına doğru önemli bir artış gösterdi (Şekil 3B). VINV1, S5 aşamasında en yüksek ifadeye sahipken, VINV2, olgunlaşan mor meyvede (S4) önceki iki olgunlaşmamış yeşil meyve aşamasına göre 13 kat daha yüksek ifade gösterdi ve ardından tamamen olgun mavi meyvede azaldı (Şekil 3B). Çalışmalar, VINV'lerin, meyve gelişiminin olgun aşamalarında sakarozun vakuollerde depolanması ve yeniden sentezinin temel belirleyicileri olduğunu göstermiştir (Husain ve diğerleri, 2001 ; Tang ve diğerleri, 1999 ). Bu nedenle, S4 ve S5 olgunlaşma aşamalarında VINV'nin bu iki izoformunun ekspresyon seviyelerindeki artışın, vakuollerde birikmiş sükrozun heksozlara dönüştürülmesinden ve böylece tamamen olgunlaşmış yaban mersini meyvelerindeki toplam şeker konsantrasyonlarının yükselmesinden sorumlu olabileceğini tahmin edebiliriz. Masa 1).

                      NINV'nin tanımlanan tüm izoformları, S5'te önemli ölçüde artan NINV2 ve S3'ten sonra önemli ölçüde azalan NINV5 dışında, meyve olgunlaşması sırasında nispeten kararlı seviyelerde ifade edildi (Şekil3C). NINV3 ve NINV4, S4 meyvesinde S3 meyvesine göre biraz azalmış ifade gösterdi ancak anlamlı değildi. NINV1, olgun kırmızı renkli meyvede (S4) en yüksek ifadeye sahipti ve NINV2, mavi renkli S5 meyvede en yüksek ifadeye sahipti (Şekil 3C). NINV aktivitesinin meyvelerdeki fruktoz-glikoz oranlarıyla doğrudan bir korelasyonu daha önce Desnoues ve arkadaşları tarafından gösterilmiştir. ( 2014 ). Sonuçlarımız, NINV'lerin yaban mersini meyvesinin gelişimi sırasında tüm gelişim aşamalarında ifade edildiğini gösterdiğinden, bu, kararlı NINV ifadesinin fruktoz miktarlarında tespit edilen artışa yol açtığı anlamına gelebilir (Tablo 1) sükrozun sitoplazmada ayrılmasıyla elde edilen tüm gelişim aşamalarında (Hao-Ran ve diğerleri, 2017 ).

                      Üç HK izoformu ( HK1 , HK2 ve HK4 ) S2 ve S3 gelişim aşamaları arasında benzer şekilde ifade edildi (Şekil 4A), meyve olgunlaşması ilerledikçe HK3 ifadesi azalma eğilimindeydi. Daha sonra, diğer izoformların aksine, S4 ve S5'te HK2'nin ifadesi önemli ölçüde ve bir dereceye kadar HK1 tarafından arttı. Glikoz yalnızca HK'ler tarafından fosforile edilebilirken, fruktoz hem HK'ler hem de FK'ler tarafından fosforile edilir, ancak fruktoz kısımlarına yönelik afinite FK'lerde daha yüksektir (Granot ve diğerleri, 2013 ) . Çalışmamızda, FK5 dışındaki tüm FK'lerin S2 aşamasından sonra ekspresyonunda artış olduğu ve en yüksek ekspresyon seviyesinin S3 meyvelerinde olduğu bulundu. Bununla birlikte, geç gelişim aşamalarında (S4 ve S5), ifade seviyeleri azaldı (Şekil 4B). HK'ler ve FK'ler, erken ve geç meyve gelişim aşamalarında ilginç bir karşıt ifade modelleri gösterdi. Sonuç, fruktoz içeriğindeki bir artışın, olgunlaşmanın başlangıcındaki FK'lerin ve geç meyve gelişim aşamalarında hem FK'lerin hem de HK'lerin etkileşimine atfedilebileceğini göstermektedir.
                      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı PPL-174-0-g006.jpg'dir.
                      ŞEKİL 4
                      Yabanmersini meyvesi gelişimi sırasında (A) HK ve (B) FK genlerinin ifadesi . Göreceli gen ekspresyon seviyeleri, qRT-PCR ile ölçüldü ve GAPDH'ye normalleştirildi . Değerler, dört biyolojik kopyanın ortalamasıdır ±  sd . Yıldız işaretleri, Student t -testi (* P  ≤0.05) kullanılarak önceki gelişim aşamasıyla karşılaştırıldığında önemli bir farkı gösterir . S2, küçük olgunlaşmamış yeşil meyve; S3, büyük olgunlaşmamış yeşil meyve; S4, olgunlaşan mor meyve; S5, tamamen olgun mavi meyve

                      Sükroz metabolizma enzimleri ile ilgili olarak, SPS1 ekspresyonu geç evrelerde artarken, S4 ve S5 evrelerinde SPS2 ve SPS3 ekspresyonu düşüktü (Şekil 5A). SPS2 ifadesi, S3 meyvelerinde en yüksekti. SPS, sakarozun yeniden sentezinde yer alan anahtar enzimdir ve olgunlaşmanın başlangıcında ekspresyondaki artış, sükrozun aktif olarak, özellikle S3 aşamasında geri dönüştürüldüğünü gösterir. Spesifik olarak, SPS1'in ifadesi sükroz içeriğindeki artışa katkıda bulunabilir (Tablo 1), önceki çalışmalara göre (Vimolmangkang ve diğerleri, 2016 ). SPP'ler , SPP1 ve SPP2 seviyelerinin biraz arttığı S4 dışında, gelişim aşamaları boyunca önemli bir değişiklik göstermedi (Şekil 5B). Tek karakterize edilen SS izoform ifadesi, erken meyve gelişiminde daha yüksekti ve daha sonraki aşamalarda azalma eğilimindeydi (Şekil 5C). Daha önce, SS ifadesinin sükroz sonrası boşaltma yollarına dahil olduğu gösterilen kivi olgunlaşmasında benzer bir ifade eğilimi gözlemlendi (Chen ve diğerleri, 2017 ). Genel olarak, olgunlaşma sırasında SS ekspresyonundaki bir artış, daha önceki bir çalışmada ve bulgularımızla uyumlu olarak, iklimsel olmayan iki meyvede, üzüm ve çilekte gösterilen düşük sükroz seviyeleri ile sonuçlanır (Tian ve diğerleri, 2012 ) .
                      Resim, çizim vb. içeren harici bir dosya. Nesne adı PPL-174-0-g007.jpg'dir.
                      ŞEKİL 5
                      Yaban mersini meyvesi gelişimi sırasında sakaroz metabolizma genlerinin (A) SPS , (B) SPP ve (C) SS ifadesi. Göreceli gen ekspresyon seviyeleri, qRT-PCR ile ölçüldü ve GAPDH'ye normalleştirildi . Değerler, dört biyolojik kopyanın ortalamasıdır ± sd . Yıldız işaretleri, Student t -testi (* P  ≤0.05) kullanılarak önceki gelişim aşamasıyla karşılaştırıldığında önemli bir farkı gösterir . S2, küçük olgunlaşmamış yeşil meyve; S3, büyük olgunlaşmamış yeşil meyve; S4, olgunlaşan mor meyve; S5, tamamen olgun mavi meyve

                      3.4. Yaban mersini meyvesi gelişim aşamalarında şekerle ilgili enzim aktiviteleri
                      CWINV ve VINV'nin enzim aktiviteleri erken gelişim aşamalarında (S2 ve S3) sadece çok düşük seviyelerde tespit edildi, ancak aktiviteleri S3'ten itibaren önemli ölçüde arttı ve en yüksek aktivite S5 meyvelerinde bulundu (Şekil 6A,B). Genel olarak, CWINV'ler, tane gelişiminin erken aşamalarında sükroz boşaltmada yer alan lavaboya özgü enzimler olarak kabul edilir (Wang ve diğerleri, 2014 ). Bununla birlikte, bazı araştırmalar, CWINV'lerin gen ekspresyonu ve enzim aktivitelerinin meyvelerde daha düşük olduğunu ve olgunlaşma başlangıcındaki apoplastik sükroz boşaltma ile doğrudan ilişkili olmayabileceğini göstermiştir (Li ve diğerleri, 2012 ) . Buna karşılık, NINV aktivitesi, S2 meyvelerinde erken bulundu, ardından tamamen olgun S5 meyvelerinde aktivitede önemli bir düşüş bulundu (Şekil 6C). Hem sakaroz metabolizma enzimlerinin, hem de SPS ve SS'nin aktiviteleri, olgunlaşmamış meyvelerde de tespit edildi, ancak aktiviteleri yalnızca daha sonraki aşamalarda artma eğilimindeydi (Şekil 6D,E). Bu enzimler S3 aşamasında zıt bir eğilim sergilerler, yani SPS aktivitesi S3'te en yüksek iken SS aktivitesi aynı aşamada en düşüktür, bu yabanmersini meyvelerinde meydana gelen sakaroz yeniden sentezinin kritik aşaması olabilir (nafile döngü). Sonuçlarımız önceki çalışmalarla tutarlıdır, çünkü daha önce SS aktivitelerinin genellikle NINV'lerden daha yüksek olduğu gösterilmiştir, çünkü ilki geri dönüşümlü dönüşüm ve lavabo dokularında daha iyi homeostaz üretir (Moscatello ve diğerleri, 2011 ) . SS'nin meyve olgunlaşmasının başlangıcında plastidlerde nişasta birikimine de dahil olması muhtemeldir (Ross ve diğerleri, 1994 ). Bununla birlikte, plastidlerde geç meyve gelişimi sırasında nişasta bozunması meydana gelir (Zhu ve diğerleri, 2017).). Nişasta parçalayıcı amilazların (α- ve β-amilaz) aktivitelerinin tamamen olgun meyvelere (S5) doğru arttığı ve yabanmersini meyve gelişiminin diğer aşamalarında sadece düşük seviyelerde tespit edildiği bulundu (Şekil 6F,G). Bu, depolanan nişasta granüllerinin, ancak meyve tamamen geliştikten sonra plastidlerin içindeki heksoz dönüşümü için hızla kullanıldığını gösterebilir. Yaban mersini meyvesindeki dört gelişim aşaması sırasında hem gen ekspresyonunu hem de enzim aktivitelerini ilişkilendirmek ve özetlemek için, her iki asit INV'nin de S3-S4 aşamaları sırasında çöküntü kuvveti geliştirmede yer aldığı sonucuna varıyoruz. Aynı şekilde, HK'ler ve FK'ler de gelişmekte olan meyvelerde karbon kaynağı sağlamak için bu aşamalarda hayati öneme sahiptir. Çözünür şeker birikiminde yer alan başlıca enzimler SS ve SPS olabilir ( SPS1), olgunlaşmanın başlangıcında sakarozdan yararlanır ve yaban mersini geç olgunlaşma aşamalarında yeniden sentez meydana gelir. Ayrıca, S3-S4 aşamalarında SS tarafından UDP-şekerlerinin oluşumunun , S4'ten yaban mersini meyvelerinin deri ve etindeki rengi geliştiren glikosile antosiyaninlerin üretimi için neden kullanılabileceğini de açıklar (Tian ve diğerleri, 2012) . aşamadan itibaren.
                      Resim, çizim vb. içeren harici bir dosya. Nesne adı PPL-174-0-g005.jpg'dir.
                      ŞEKİL 6
                      Yaban mersini meyvesi gelişimi sırasında (A) CWINV, (B) VINV, (C) NINV, (D) SPS, (E) SS, (F) α-amilaz ve (G) β-amilaz enzim aktivitelerindeki değişiklikler. Enzim aktiviteleri, her tahlilden mmol g -1 h -1 FW cinsinden salınan karşılık gelen şeker miktarları olarak ifade edilir. Değerler, dört biyolojik kopyanın ortalama ±  sd'sini temsil eder ve yıldız işaretleri, student t -testi (* P  ≤0.05) kullanılarak önceki gelişim aşamasıyla karşılaştırıldığında anlamlı farkı gösterir . S2, küçük olgunlaşmamış yeşil meyve; S3, büyük olgunlaşmamış yeşil meyve; S4, olgunlaşan mor meyve; S5, tamamen olgun mavi meyve 3.5. Yaban mersini meyve şekeri metabolizmasında ışık spektral kalitesinin etkisi


                      Tamamlayıcı ışık kalitesi tedavisi, yabanmersini meyvesi şeker metabolizması üzerinde önemli bir etkiye sahipti. Glikoz ve fruktozun bireysel şeker konsantrasyonları kırmızı ışık tedavisi altında (sırasıyla 165 ve 210 mg g -1 DW) kontrol meyvelerine kıyasla önemli ölçüde daha yüksekti (Şekil7A). Mavi ışık ayrıca olgun meyvelerdeki glikoz ve fruktoz içeriğini de biraz artırdı ( sırasıyla 141 ve 166 mg g -1 DW). Işık tedavileri (2–3,5 mg g -1 DW) altında sükroz seviyelerinin çok düşük olduğu ve tamamlayıcı ışık tedavilerinden önemli ölçüde etkilenmediği bulundu (Şekil 7A).
                      İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı PPL-174-0-g004.jpg'dir.
                      ŞEKİL 7
                      Yaban mersini meyvelerinde spektral ışık kalitesinin şeker metabolizmasına etkisi. (A) Hafif işlem görmüş yaban mersini meyvelerinde şeker içeriği. Değerler (mg g −1 DW), üç biyolojik kopyanın ortalama ±  sd'sini temsil eder. Farklı harfler, tek yönlü ANOVA ve ardından Tukey'nin post hoc testi ( P ile analiz edilen ışık tedavileri arasındaki önemli farklılıkları gösterir. <0,05). (B) Kırmızı ve mavi ışığa tepki olarak şeker metabolizmasıyla ilgili DEG'ler. İfade seviyeleri, log2 katlama değişikliklerine dayalı olarak renk kodu kutularında temsil edilir. CWINV, hücre duvarı invertazı; FK, fruktokinaz; GS, galaktinol sentaz; HK, heksokinaz; NINV, nötr invertaz; PFK, fosfofruktokinaz; PGM, fosfoglukomutaz; RFS, rafinol sentaz; SPP, sükroz fosfat fosfataz; SPS, sükroz fosfat sentaz; SS, sükroz sentaz; UDPG PP, UDP glikoz/galaktoz pirofosforilaz; UGE, UDP-galakturonat 4-epimeraz; VINV, vakuolar invertaz; α-ami, α-amilaz; α-gal, α-galaktosidaz; β-ami, β-amilaz

                      Kontrol ve ışık tedavileri (kırmızı, mavi) arasında bulunan en yüksek DEG'ler Şekil'de gösterilmiştir. 7B. Her iki ışık tedavisi de, plastidlerde nişasta parçalanmasında yer alan anahtar genler olan α- ve β-amilazları yukarı regüle etti. Kırmızı ışık, β-amilazın üç katına kadar artmasını sağladı, bu da plastidlerin içindeki maltoz seviyelerinin yükseldiğini ve daha sonra glikoz gibi diğer heksozlara dönüştürülebileceğini, tamamen olgunlaşmış meyveye tatlılık ve tat kattığını gösterir (Xiao ve ark., 2004). 2018 ). Mavi ışık, PGM, α-galaktosiltransferaz (α-gal) ve UDP-glikopirofoforilaz (UDPG-PP) gibi galaktoz metabolizmalarında yer alan heksoz arası dönüşüm enzimlerini kodlayan genleri aşağı doğru regüle etti (Şekil 7B). Öte yandan, kırmızı ışık, galaktoz türevi ve hücre duvarına bağlı polisakkaritlerin üretilmesinde yer alması muhtemel olan a-galaktosiltransferaz genini yukarı regüle etti (Edwards ve diğerleri, 1999 ) . Galaktinol sentaz (GS), UDP-galaktoz epimeraz (UGE) ve rafinoz sentaz (RFS) gibi galaktoz metabolizmasından kaynaklanan diğer anahtar enzim genleri de kırmızı ışık tedavisinde yukarı regüle edildi (Şekil 7B). Nispeten mavi ışık, HK, FK ve PFK dahil olmak üzere heksoz fosforile edici enzimleri kodlayan genleri kırmızı ışıktan daha fazla yukarı regüle etti. VINV, her iki ışık tedavisiyle de yukarı regüle edildi (Şekil 7B), bu da INV'ler tarafından sakarozun heksozlara parçalanmasının, ışık kalitesine yanıt olarak NINV'ler tarafından sitozolden daha çok VINV'ler tarafından vakumlu boşluklarda meydana geldiğini öne sürer (Rabot ve diğerleri, 2014) . Aynı şekilde, hafif tedaviler altında düşük ekspresyon gösteren NINV'ler tarafından da kanıtlanmaktadır . Sükroz enzimlerini (SS ve SPP) kodlayan genler kırmızı ışık altında yukarı regüle edilirken, SPP ve SPS mavi ışık altında aşağı regüle edildi (Şekil 7B). Tüm CWINV'ler, her iki ışık tedavisi altında aşağı regüle edildi. Sonuç, CWINV aktivitelerinin meyve tutumu sırasında abiyotik stres altında azaldığını ve en çok değişen sirkadiyen ritim sırasında etkilendiğini gösteren daha önceki çalışmalarla uyumludur (Liu ve diğerleri, 2016; Proels & Hückelhoven , 2014 ) . Örneğin, UV ışık stresi, bitkinin yüksek doğal antioksidan mekanizmalarına tepkisinin bir parçası olarak CWINV'nin aşağı regülasyonuna neden oluyor (Nishanth ve diğerleri, 2018) .). Dolayısıyla, ışık kalitesinin CWINV üzerindeki etkisi pleiotropik bir etki olabilir. Bu nedenle, ışık kalitesinin CWINV yoluyla hücre içi kaynak dokulardan karbonhidrat kullanımını engelleyebileceği sonucuna vardık, ancak C-eşdeğerleri, hücreler arası vakuollerden heksoz ara dönüşümlerinden ve ayrıca plastidlerden maltoz havuzlarına gelişmiş bir nişasta dönüşümü ile kullanılır, böylece çözünür şeker konsantrasyonlarını arttırır ve dut dokularında lavabo gücü.

                      Git: 4. SONUÇLAR
                      Mevcut çalışmada, yabanmersinindeki şeker metabolizmasını kodlayan genleri meyve gelişim aşamalarında belirledik ve analiz ettik. Sonuçlar, asit INV'lerin gen ekspresyonu ve enzim aktivitelerinin yabanmersini meyvesi gelişiminin başlangıcında düşük olduğunu, oysa bu geri dönüşümsüz sükroz-dönüştürme enzimi kodlayan genlerin ekspresyonunda önemli bir artışın daha sonraki olgunlaşma aşamalarında tespit edildiğini, muhtemelen bundan sorumlu olduğunu gösterdi. olgun meyvelere glikoz ve fruktoz birikimi. Sonuçlarımız ayrıca, SS ve SPS'nin büyük olasılıkla geri dönüşümlü sükroz dönüşümlerinde yer alan anahtar enzimler olduğunu gösterir, çünkü bu enzimlerin hem aktivitesi hem de gen ekspresyon seviyesi (SS, SPS1), yabanmersini meyvesinin dört gelişim aşamasının tamamında tutarlıydı. Ayrıca, sonuçlarımız tüm INV'lerin, HK'lerin, ve sükroz yeniden sentezleyen enzimler (SS, SPS), fruktoz ve glikozun en bol bulunan şekerler olduğu tamamen olgun meyvelerde şekerlerin nihai birikimine katkıda bulunmuştur. Işık spektral kalitesine yanıt olarak, transkriptomik analizimiz, hem kırmızı hem de mavi ek ışık ışınlamasının, muhtemelen heksoz içeriğindeki artışa katkıda bulunan nişasta parçalayıcı enzimleri kodlayan genler dahil olmak üzere şekerle ilgili birçok genin ekspresyonunu tetiklediğini gösteriyor. Ek olarak, her iki ışık kalitesi de CWINV ifadesi üzerinde olumsuz bir etkiye sahipti, ancak kırmızı ışık altında glikoz ve fruktoz içeriğindeki artıştan muhtemelen hem HK'ler hem de VINV'lerdeki yukarı regülasyon sorumluydu. Genel olarak, ek kırmızı ışığın yaban mersini meyvesindeki toplam şeker konsantrasyonlarını yükseltmede önemli bir etkisi oldu.

                      Git: ÇIKAR ÇATIŞMASI
                      Yazarlar herhangi bir çatışma ve çıkar çatışması olmadığını beyan ederler.

                      Git: YAZAR KATKILARI
                      Laura Jaakola ve Katja Karppinen projeyi kavramsallaştırdı. Amos Samkumar, enzim aktivite deneylerini gerçekleştirdi, transkriptom verilerini analiz etti ve taslağı yazdı. Binita Dhakal ve Katja Karppinen, gen ekspresyonu analizlerini gerçekleştirdi. Katja Karppinen, Binita Dhakal'ın da katkısıyla şeker içeriğini ölçtü. Laura Jaakola, Katja Karppinen ve Inger Martinussen taslağın düzenlenmesine ve redaksiyona katkıda bulundular. Tüm yazarlar son makaleyi okudu ve onayladı.


                      Git: Destek Bilgisi
                      Tablo S1. qRT-PCR analizinde kullanılan primerlerin listesi.

                      Tablo S2. V. myrtillus meyvesinden tanımlanmış şeker metabolizması genleri . Karşılık gelen diziler, V. virgatum'dan alınır ve bunların TSA kimlikleri, aşağıdaki sütunda sağlanır.
                      Ek veri dosyası için buraya tıklayın. (27K, docx)

                      Git: TEŞEKKÜRLER
                      Yazarlar, Norveç Arktik Üniversitesi UiT'nin fitotron tesisinde ışık deneyleri kurma konusunda teknik yardım için Leidulf Lund'a teşekkür etmek ister. Çalışma, NordPlant tarafından LJ'ye mali olarak desteklenmiştir (NordForsk hibe no. 84597).

                      Git: notlar
                      Samkumar, A. , Karppinen, K. , Dhakal, B. , Martinussen, I. & Jaakola, L. (2022) Yaban mersini ( Vaccinium myrtillus L.) meyve gelişimi sırasında şeker metabolizmasına ilişkin görüşler . Physiologia Plantarum , 174 ( 2 ), e13657. Şu adresten edinilebilir: 10.1111/ppl.13657 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]


                      T. Naegele tarafından düzenlendi

                      Finansman bilgileri NordPlant‐NordForsk, Hibe/Ödül Numarası: 84597

                      Git: VERİ KULLANILABİLİRLİK BEYANI
                      Bu çalışmanın bulgularını destekleyen veriler, http://www.ncbi.nlm.nih.gov/bioproject/747684 adresindeki NCBI-SRA veritabanında açık bir şekilde mevcuttur , referans numarası (PRJNA747684).

                      Git: REFERANSLAR
                      • Akšić, MF , Tosti, T. , Sredojević, M. , Milivojević, J. , Meland, M. & Natić, M. (2019) Organik ve entegre üretimde yetiştirilen yaban mersini ve çilek çeşitlerinin yaprak ve meyveleri arasındaki şeker profilinin karşılaştırılması sistem . Plants , 8 ( 7 ), 205. 10.3390/plants8070205 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Althammer, M. , Blöchl, C. , Reischl, R. , Huber, CG & Tenhaken, R. (2020) Fosfoglukomutaz bitkilerde galaktoz toksisitesi için hedef değildir . Bitki Biliminde Sınırlar , 11 , 167. 10.3389/fpls.2020.00167 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Borsani, J., Budde, CO, Porrini, L., Lauxmann, MA, Lombardo, VA, Murray, R. ve diğerleri. (2009) Hasattan sonra şeftali meyvesinin karbon metabolizması: organik asit ve şeker seviyesi modifikasyonlarında yer alan enzimlerdeki değişiklikler . Deneysel Botanik Dergisi , 60 ( 6 ), 1823–1837. 10.1093/jxb/erp055 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Brummell, D. (2006) Meyve olgunlaşmasında hücre duvarı demontajı . Fonksiyonel Bitki Biyolojisi , 33 ( 2 ), 103. 10.1071/fp05234 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Chen, C. , Yuan, Y. , Zhang, C. , Li, H. , Ma, F. & Li, M. (2017) Sükroz floem boşaltma, Actinidia meyvesinde yüksek sükroz sentaz içeren apoplastik bir yol izler . Bitki Bilimi , 255 , 40–50. 10.1016/j.plantsci.2016.11.011 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Chen, XL , Wang, LC , Li, T. , Yang, QC & Guo, WZ (2019) Kırmızı ve mavi LED ışığın farklı aydınlatma modlarına maruz kalan marulda şeker birikimi ve büyümesi . Scientific Reports , 9 ( 1 ), 6926. 10.1038/s41598-019-43498-8 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Chen, T. , Zhang, Z. , Li, B. , Qin, G. & Tian, ​​S. (2021) Meyve gelişimi sırasında şeker metabolizmasını ve taşınmasını optimize etmek için moleküler temel . aBIOTECH 2 , 2 , 330–340. 10.1007/s42994-021-00061-2 [ CrossRef ] [ Google Akademik ]
                      • Cho, YG & Kang, KK (2020) Bitkilerde nişasta metabolizmasının fonksiyonel analizi . Plants , 9 ( 9 ), 1152. 10.3390/plants9091152 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Dai, Z. , Wu, H. , Baldazzi, V. , van Leeuwen, C. , Bertin, N. , Gautier, H. ve diğerleri. (2016) Etli meyvelerde çözünür şeker konsantrasyonu bileşenlerinin türler arası karşılaştırmalı analizi . Bitki Biliminde Sınırlar , 7 , 649. 10.3389/fpls.2016.00649 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Dare, AP , Günther, CS , Grey, AC , Guo, G. , Demarais, NJ , Cordiner, S. ve diğerleri. (2022) Yaban mersini ( Vaccinium myrtillus ) meyvesindeki polifenollerin ve ilgili birincil metabolitlerin gelişimsel dağılım modellerinin çözümlenmesi . Gıda Kimyası , 374 , 131703. 10.1016/j.foodchem.2021.131703 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Decker, D. & Kleczkowski, LA (2019) UDP-şeker üreten pirofosforilazlar: örtüşen substrat özgüllüklerine sahip farklı ve temel enzimler, glikosilasyon reaksiyonları için de novo öncüler sağlar . Frontiers in Plant Science , 9 , 1822. 10.3389/fpls.2018.01822 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Desnoues, E. , Gibon, Y. , Baldazzi, V. , Signoret, V. , Génard, M. & Quilot-Turion, B. (2014) Farklı fruktoza sahip bir şeftali soyunda meyve gelişimi sırasında şeker metabolizmasının profilinin çıkarılması glikoz oranları . BMC Bitki Biyolojisi , 14 ( 1 ), 12–14. 10.1186/s12870-014-0336-x [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Doidy, J. , Grace, E. , Kühn, C. , Simon-Plas, F. , Casieri, L. & Wipf, D. (2012) Bitkilerde ve mantarlarla etkileşimlerinde şeker taşıyıcıları . Bitki Biliminde Eğilimler , 17 ( 7 ), 413–422. 10.1016/j.tplants.2012.03.009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Duan, Y. , Yang, L. , Zhu, H. , Zhou, J. , Sun, H. & Gong, H. (2021) Solanum lycopersicum'daki sükroz fosfat sentaz, sükroz sentaz ve invertaz gen ailelerinin yapı ve ekspresyon analizi . International Journal of Molecular Sciences , 22 ( 9 ), 4698. 10.3390/ijms22094698 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Edwards, M., Dickson, C., Chengappa, S., Sidebottom, C., Gidley, M. & Reid, J. (1999) Bitki hücre duvarı matrisi polisakarit biyosentezinin zara bağlı bir galaktosiltransferazının moleküler karakterizasyonu . The Plant Journal , 19 ( 6 ), 691–697. 10.1046/j.1365-313x.1999.00566.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Gangl, R. & Tenhaken, R. (2016) Raffinose ailesi oligosakkaritler, tohumlarda galaktoz depoları görevi görür ve Arabidopsis'in karanlıkta hızlı çimlenmesi için gereklidir . Bitki Biliminde Sınırlar , 7 , 1115. 10.3389/fpls.2016.01115 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Gerrits, N. , Turk, S. , van Dun, K. , Hulleman, S. , Visser, R. , Weisbeek, P. & Smeekens, S. (2001) Plastidlerde sükroz metabolizması . Bitki Fizyolojisi , 125 ( 2 ), 926–934. 10.1104/pp.125.2.926 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Granot, D., David-Schwartz, R. & Kelly, G. (2013) Hexose kinazlar ve bunların şeker algılama ve bitki gelişimindeki rolü . Bitki Biliminde Sınırlar , 4 , 44. 10.3389/fpls.2013.00044 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Granot, D. , Kelly, G. , Stein, O. & David-Schwartz, R. (2014) Şekerlerin bitki fizyolojisi ve gelişimi üzerindeki etkilerinde hekzokinaz ve fruktokinazın önemli rolleri . Deneysel Botanik Dergisi , 65 ( 3 ), 809–819. 10.1093/jxb/ert400 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Hagenimana, V. , Vézina, L.-P. & Simard, RE (1994) Tatlı patates α- ve β-amilazlar: endojen inhibitörlerle karakterizasyon ve kinetik çalışmalar . Gıda Bilimi Dergisi , 59 ( 2 ), 373–376. 10.1111/j.1365-2621.1994.tb06970.x [ CrossRef ] [ Google Akademik ]
                      • Hammond, JP & White, PJ (2008) Floemde sükroz taşınması: fosfor açlığına kök yanıtlarının entegre edilmesi . Deneysel Botanik Dergisi , 59 , 93–109. [ PubMed ] [ Google Akademik ]
                      • Hao-Ran, W. , Jia-Yu, Y. , Tong-Tong, Z. , Na, C. , Sheng, H. , Rui, Z. ve diğerleri. (2017) Domates meyvesinde nötr invertaz aktivitesi ile şeker içeriği arasındaki ilişki ve fonksiyonel tahmin analizi . Biyoteknoloji Dergisi Uluslararası , 20 ( 1 ), 1–6. 10.9734/bji/2017/37195 [ CrossRef ] [ Google Akademik ]
                      • Hu, W. , Sun, DW , Pu, H. & Pan, T. (2016) Meyvelerde şeker metabolizmasının hızlı izlenmesine yönelik yöntem ve tekniklerdeki son gelişmeler . Gıda Bilimi ve Gıda Güvenliğinde Kapsamlı İncelemeler , 15 ( 6 ), 1067–1079. 10.1111/1541-4337.12225 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Husain, SE , Thomas, BJ , Kingston-Smith, AH & Foyer, CH (2001) İnvertaz proteini, aktivite değil, Lycopersicon esculentum ve L. pimpinellifolium meyvesinin gelişimi boyunca mevcuttur . Yeni Fitolog , 150 ( 1 ), 73–81. 10.1046/j.1469-8137.2001.00064.x [ CrossRef ] [ Google Akademik ]
                      • Jia, H. , Wang, Y. , Sun, M. , Li, B. , Han, Y. , Zhao, Y. ve diğerleri. (2013) Sükroz, çilek meyvesinin gelişimi ve olgunlaşmasının düzenlenmesinde yer alan bir sinyal olarak işlev görür . Yeni Fitolog , 198 ( 2 ), 453–465. 10.1111/nph.12176 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Julius, BT , Leach, KA , Tran, TM , Mertz, RA & Braun, DM (2017) Bitkilerde şeker taşıyıcıları: yeni görüşler ve keşifler . Bitki ve Hücre Fizyolojisi , 58 ( 9 ), 1442–1460. 10.1093/pcp/pcx090 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Kähkönen, MP , Heinämäki, J. , Ollilainen, V. & Heinonen, M. (2003) Berry antosiyaninler: izolasyon, tanımlama ve antioksidan aktiviteler . Gıda ve Tarım Bilimi Dergisi , 83 ( 14 ), 1403–1411. 10.1002/jsfa.1511 [ CrossRef ] [ Google Akademik ]
                      • Karppinen, K. , Hirvelä, E. , Nevala, T. , Sipari, N. , Suokas, M. & Jaakola, L. (2013) Yaban mersininde meyve gelişimi ve olgunlaşma sırasında absisik asit seviyelerindeki değişiklikler ve ilgili gen ekspresyonu ( Vaccinium myrtillus L.) . Fitokimya , 95 , 127–134. 10.1016/j.phytochem.2013.06.023 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Kumar, S. , Stecher, G. , Li, M. , Knyaz, C. & Tamura, K. (2018) MEGA X: hesaplama platformlarında moleküler evrimsel genetik analizi . Molecular Biology and Evolution , 35 , 1547–1549. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                      • Li, M. , Feng, F. & Cheng, L. (2012) Elma meyvesi gelişimi sırasında şeker metabolizması ve birikiminde yer alan genlerin ifade kalıpları . PLoS Bir , 7 ( 3 ), e33055. 10.1371/journal.pone.0033055 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Li, Y. , Xin, G. , Wei, M. , Shi, Q. , Yang, F. & Wang, X. (2017) Farklı ışık kalitelerine maruz bırakıldığında domates fidesi yapraklarında karbonhidrat birikimi ve sükroz metabolizması tepkileri . Scientia Bahçe Bitkileri , 225 , 490–497. 10.1016/j.scienta.2017.07.053 [ CrossRef ] [ Google Akademik ]
                      • Liu, YH , Offler, CE & Ruan, YL (2016) Hücre duvarı invertazı, ROS'tan bağımsız hücre ölümünü baskılayarak ısı stresi altında meyve tutumunu destekler . Bitki Fizyolojisi , 172 ( 1 ), 163–180. 10.1104/pp.16.00959 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Loescher, W. (1987) Yüksek bitkilerde şeker alkollerinin fizyolojisi ve metabolizması . Physiologia Plantarum , 70 ( 3 ), 553–557. 10.1111/j.1399-3054.1987.tb02857.x [ CrossRef ] [ Google Akademik ]
                      • Lowell, CA , Tomlinson, PT & Koch, KE (1989) Gelişmekte olan narenciye meyvelerinde taşıma dokularında ve bitişik lavabo yapılarında sakaroz metabolize edici enzimler . Bitki Fizyolojisi , 90 ( 4 ), 1394–1402. 10.1104/pp.90.4.1394 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Mikulic-Petkovsek, M. , Schmitzer, V. , Slatnar, A. , Stampar, F. & Veberic, R. (2015) Farklı yerlerde yetişen yabani yabanmersininin ( Vaccinium myrtillus L.) meyve kalite parametrelerinin karşılaştırılması . Gıda ve Tarım Bilimi Dergisi , 95 ( 4 ), 776–785. 10.1002/jsfa.6897 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Milivojević, J. , Maksimović, V. , Dragišić Maksimović, J. , Radivojević, D. , Poledica, M. & Ercisli, S. (2012) Vaccinium meyvelerinin başlıca tat ve sağlıkla ilgili bileşiklerinin karşılaştırması . Türk Biyoloji Dergisi , 36 , 738–745. 10.3906/biy-1206-39 [ CrossRef ] [ Google Akademik ]
                      • Miller, GL (1959) İndirgeyici şekerin belirlenmesi için dinitrosalisilik asit reaktifinin kullanımı . Analitik Kimya , 31 ( 3 ), 426–428. 10.1021/ac60147a030 [ CrossRef ] [ Google Scholar ]
                      • Moing, A. (2000) Bazı yüksek bitkilerde karbonhidrat rezervi olarak şeker alkolleri . Bitki Bilimindeki Gelişmeler , 26 , 337–358. 10.1016/s0378-519x(00)80017-3 [ CrossRef ] [ Google Akademik ]
                      • Moscatello, S. , Famiani, F. , Proietti, S. , Farinelli, D. & Battistelli, A. (2011) Sükroz sentaz, büyüyen kivi meyvesinde ( Actinidia deliciosa , cv Hayward) karbonhidrat metabolizmasına ve bağıl büyüme hızına hakimdir . Scientia Bahçe Bitkileri , 128 ( 3 ), 197–205. 10.1016/j.scienta.2011.01.013 [ CrossRef ] [ Google Akademik ]
                      • Murayama, S. & Handa, H. (2007) Pirinçte alkalin/nötr invertaz genleri: alkalin/nötr invertazlar bitki mitokondrilerinde ve ayrıca plastidlerde bulunur . Planta , 225 ( 5 ), 1193–1203. 10.1007/s00425-006-0430-x [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Nguyen, N. , Suokas, M. , Karppinen, K. , Vuosku, J. , Jaakola, L. & Häggman, H. (2018) Yabanmersini meyvesinin de novo transkriptom ve qRT-PCR ile olgunlaşmasıyla ilgili aday transkripsiyon faktörlerinin tanınması analizler . Scientific Reports , 8 ( 1 ), 9943. 10.1038/s41598-018-28158-7 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Nguyen-Quoc, B. & Foyer, C. (2001) Domates meyvesinin sakaroz metabolizmasında invertaz ve sükroz sentazı içeren 'boş çevrimlerin' rolü . Deneysel Botanik Dergisi , 52 , 881–889. 10.1093/jexbot/52.358.881 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Nielsen, SS (2010) Toplam karbonhidratlar için fenol-sülfürik asit yöntemi. İçinde: Nielsen, SS (Ed.) Gıda analizi laboratuvarı kılavuzu . Boston, MA: Springer US, s. 47–53. [ Google Akademik ]
                      • Nishanth, MJ , Sheshadri, SA , Rathore, SS , Srinidhi, S. & Simon, B. (2018) Catharanthus roseus'ta özelleşmiş metabolizmayı etkileyen abiyotik stres koşulları altında hücre duvarı invertazının ekspresyon analizi . Scientific Reports , 8 ( 1 ), 15059. 10.1038/s41598-018-33415-w [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Pires, TCSP , Caleja, C. , Santos-Buelga, C. , Barros, L. & Ferreira, ICFR (2020) Sağlık yararları ve endüstriyel uygulamaları olan yeni bir fenolik bileşik kaynağı olarak Vaccinium myrtillus L. meyveleri – bir inceleme . Güncel Farmasötik Tasarım , 26 ( 16 ), 1917–1928. 10.2174/1381612826666200317132507 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Proels, RK & Hückelhoven, R. (2014) Hücre duvarı invertazları, savunma tepkileri sırasında bitki metabolizmasının modülasyonundaki anahtar enzimler . Moleküler Bitki Patolojisi , 15 ( 8 ), 858–864. 10.1111/mpp.12139 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Rabot, A. , Portemer, V. , Péron, T. , Mortreau, E. , Leduc, N. , Hamama, L. ve diğerleri. (2014) Rosa hybrida vakuolar invertaz 1 düzenlemesinin ifadesinde şeker, ışık ve gibberellinlerin etkileşimi . Bitki ve Hücre Fizyolojisi , 55 ( 10 ), 1734–1748. [ PubMed ] [ Google Akademik ]
                      • Roitsch, T. & González, MC (2004) Bitki invertazlarının işlevi ve düzenlenmesi: tatlı duyumlar . Bitki Biliminde Eğilimler , 9 ( 12 ), 606–613. 10.1016/j.tplants.2004.10.009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Rolland, F., Baena-Gonzalez, E. & Sheen, J. (2006) Bitkilerde şeker algılama ve sinyalleme: korunmuş ve yeni mekanizmalar . Yıllık Bitki Biyolojisi İncelemesi , 57 , 675–709. 10.1146/annurev.arplant.57.032905.105441 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Ross, H. , Davies, H. , Burch, L. , Viola, R. & McRae, D. (1994) Patatesin ( Solanum tuberosum ) yumrulu yumrularında karbonhidrat içeriği ve sükrozu parçalayan enzimlerdeki gelişimsel değişiklikler . Physiologia Plantarum , 90 ( 4 ), 748–756. 10.1111/j.1399-3054.1994.tb02533.x [ CrossRef ] [ Google Akademik ]
                      • Ruan, YL , Jin, Y. , Yang, YJ , Li, GJ & Boyer, JS (2010) İnvertazın aracılık ettiği şeker girdisi, metabolizma ve sinyalleşme: gelişmedeki roller, verim potansiyeli ve kuraklık ve ısıya tepki . Molecular Plant , 3 ( 6 ), 942–955. 10.1093/mp/ssq044 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Samkumar, A. , Jones, D. , Karppinen, K. , Dare, AP , Sipari, N. , Espley, RV ve diğerleri. (2021) Olgunlaşan yaban mersini meyvelerinin kırmızı ve mavi ışık uygulamaları, absisik asitle düzenlenen antosiyanin biyosentezi yoluyla sinyalleşmedeki farklılıkları ortaya koyuyor . Bitki, Hücre ve Çevre , 44 ( 10 ), 3227–3245. 10.1111/pce.14158 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Souleyre, E., Iannetta, P., Ross, H., Hancock, R., Shepherd, L., Viola, R. ve diğerleri. (2004) Gelişmekte olan çilek ( Fragaria × ananassa ) meyvelerinde nişasta metabolizması . Physiologia Plantarum , 121 ( 3 ), 369–376. 10.1111/j.0031-9317.2004.0338.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Tang, GQ , Lüscher, M. & Sturm, A. (1999) Transgenik havuçta vakuolar ve hücre duvarı invertazının antisens baskısı, erken bitki gelişimini ve sükroz bölümlemesini değiştirir . Bitki Hücresi , 11 ( 2 ), 177–189. 10.1105/tpc.11.2.177 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Tauzin, AS & Giardina, T. (2014) Sükroz ve invertazlar, biyotik streslere karşı bitki savunma tepkisinin bir parçası . Bitki Biliminde Sınırlar , 5 , 293. 10.3389/fpls.2014.00293 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Tian, ​​L. , Jia, H. , Li, C. , Fan, P. , Xing, Y. & Shen, Y. (2012) Üzüm meyvesi ve çilek meyvesinin olgunlaşması sırasında sakaroz birikimi, ağırlıklı olarak sakaroz sentaz aktivitesi tarafından kontrol edilir . Bahçecilik Bilimi ve Biyoteknoloji Dergisi , 87 ( 6 ), 661–667. 10.1080/14620316.2012.11512927 [ CrossRef ] [ Google Akademik ]
                      • Topçu, H. , Değirmenci, İ. , Sönmez, D. , Paizila, A. , Karcı, H. , Kafkas, S. et al. (2022) Çilek meyvelerinin farklı gelişim evrelerinde şeker, invertaz enzim aktiviteleri ve invertaz gen ekspresyonu . Plants , 11 ( 4 ), 509. 10.3390/plants11040509 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Uleberg, E. , Rohloff, J. , Jaakola, L. , Trôst, K. , Junttila, O. , Häggman, H. ve diğerleri. (2012) Yaban mersinin kuzey ve güney klonlarının ( Vaccinium myrtillus L.) verimi ve kimyasal bileşimi üzerine sıcaklık ve fotoperiyodun etkileri . Tarım ve Gıda Kimyası Dergisi , 60 ( 42 ), 10406–10414. 10.1021/jf302924m [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Verma, AK , Upadhyay, SK , Verma, PC , Solomon, S. & Singh, SB (2011) Şeker kamışı ( Saccharum ) çeşitlerinde sükroz fosfat sentaz (SPS) ve sükroz sentaz (SS) fonksiyonel analizi . Bitki Biyolojisi , 13 , 325–332. [ PubMed ] [ Google Akademik ]
                      • Vimolmangkang, S. , Zheng, H. , Peng, Q. , Jiang, Q. , Wang, H. , Fang, T. ve diğerleri. (2016) Şeftali meyvesinde sükroz birikiminin düzenlenmesinde yer alan şeker bileşenlerinin ve genlerin değerlendirilmesi . Tarım ve Gıda Kimyası Dergisi , 64 ( 35 ), 6723–6729. 10.1021/acs.jafc.6b02159 [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Wan, H. , Wu, L. , Yang, Y. , Zhou, G. & Ruan, Y.-L. (2018) Sükroz metabolizmasının evrimi: invertazların ikilemi ve ötesi . Bitki Biliminde Eğilimler , 23 ( 2 ), 163–177. 10.1016/j.tplants.2017.11.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Wang, K. , Shao, X. , Gong, Y. , Zhu, Y. , Wang, H. , Zhang, X. ve diğerleri. (2013) Soğuk stresine maruz kalan şeftali meyvesinde ürperme hasarına bağlı çözünür karbonhidratların metabolizması . Hasat Sonrası Biyoloji ve Teknoloji , 86 , 53–61. 10.1016/j.postharvbio.2013.06.020 [ CrossRef ] [ Google Akademik ]
                      • Wang, XQ , Li, LM , Yang, PP & Gong, CL (2014) Üzüm meyvelerinden ( Vitis vinifera L.) hekzokinazların hücre duvarı invertaz ve sukroz sentaz genlerinin ekspresyonunu düzenlemedeki rolü . Bitki Hücresi Raporları , 33 ( 2 ), 337–347. 10.1007/s00299-013-1533-z [ PubMed ] [ CrossRef ] [ Google Akademik ]
                      • Wang, S., Song, M., Guo, J., Huang, Y., Zhang, F., Xu, C. ve diğerleri. (2018) Potasyum kanalı FaTPK1, çilekte ( Fragaria × ananassa ) meyve kalitesi oluşumunda kritik bir rol oynar . Bitki Biyoteknoloji Dergisi , 16 ( 3 ), 737–748. 10.1111/pbi.12824 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Xiao, YY, Kuang, JF, Qi, XN, Ye, YJ, Wu, ZX, Chen, JY ve diğerleri. (2018) Muz meyvesinin olgunlaşması sırasında nişasta bozunma sürecine ve transkripsiyonel bir aktivatör MabHLH6'nın tanımlanmasına ilişkin kapsamlı bir araştırma . Bitki Biyoteknolojisi Dergisi , 16 ( 1 ), 151–164. 10.1111/pbi.12756 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Xie, ZS , Li, B. , Forney, CF , Xu, WP & Wang, SP (2009) Üzüm meyvesinde kök kısıtlamasına tepki olarak şeker içeriği ve bağıl enzim aktivitesindeki değişiklikler . Scientia Bahçe Bitkileri , 123 ( 1 ), 39–45. 10.1016/j.scienta.2009.07.017 [ CrossRef ] [ Google Akademik ]
                      • Zhang, XM , Dou, MA , Yao, L. , Du, LQ , Li, JG & Sun, GM (2011) Ananasın farklı hasat mevsimlerinde şeker metabolizmasının dinamik analizi ( Ananas comosus L. [Merr.]) . Afrika Biyoteknoloji Dergisi , 10 ( 14 ), 2716–2723. 10.5897/ajb10.1284 [ CrossRef ] [ Google Scholar ]
                      • Zhu, X. , Zhang, C. , Wu, W. , Li, X. , Zhang, C. & Fang, J. (2017) Nişasta metabolizmasının enzim aktiviteleri ve gen ifadesi, üzüm meyvesi gelişimi hakkında bilgi sağlar . Bahçe Bitkileri Araştırması , 4 , 17018. 10.1038/hortres.2017.18 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      • Zoratti, L., Sarala, M., Carvalho, E., Karppinen, K., Martens, S., Giongo, L. ve diğerleri. (2014) Monokromatik ışık, yaban mersininde meyve gelişimi sırasında antosiyanin içeriğini arttırır . BMC Plant Biology , 14 , 377. 10.1186/s12870-014-0377-1 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                      Yorum yap


                      • #12
                        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                        Yorum yap


                        • #13
                          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                          Yorum yap


                          • #14
                            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                            Yorum yap


                            • #15
                              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                              Yorum yap

                              Hazırlanıyor...
                              X