Duyuru

Collapse
No announcement yet.

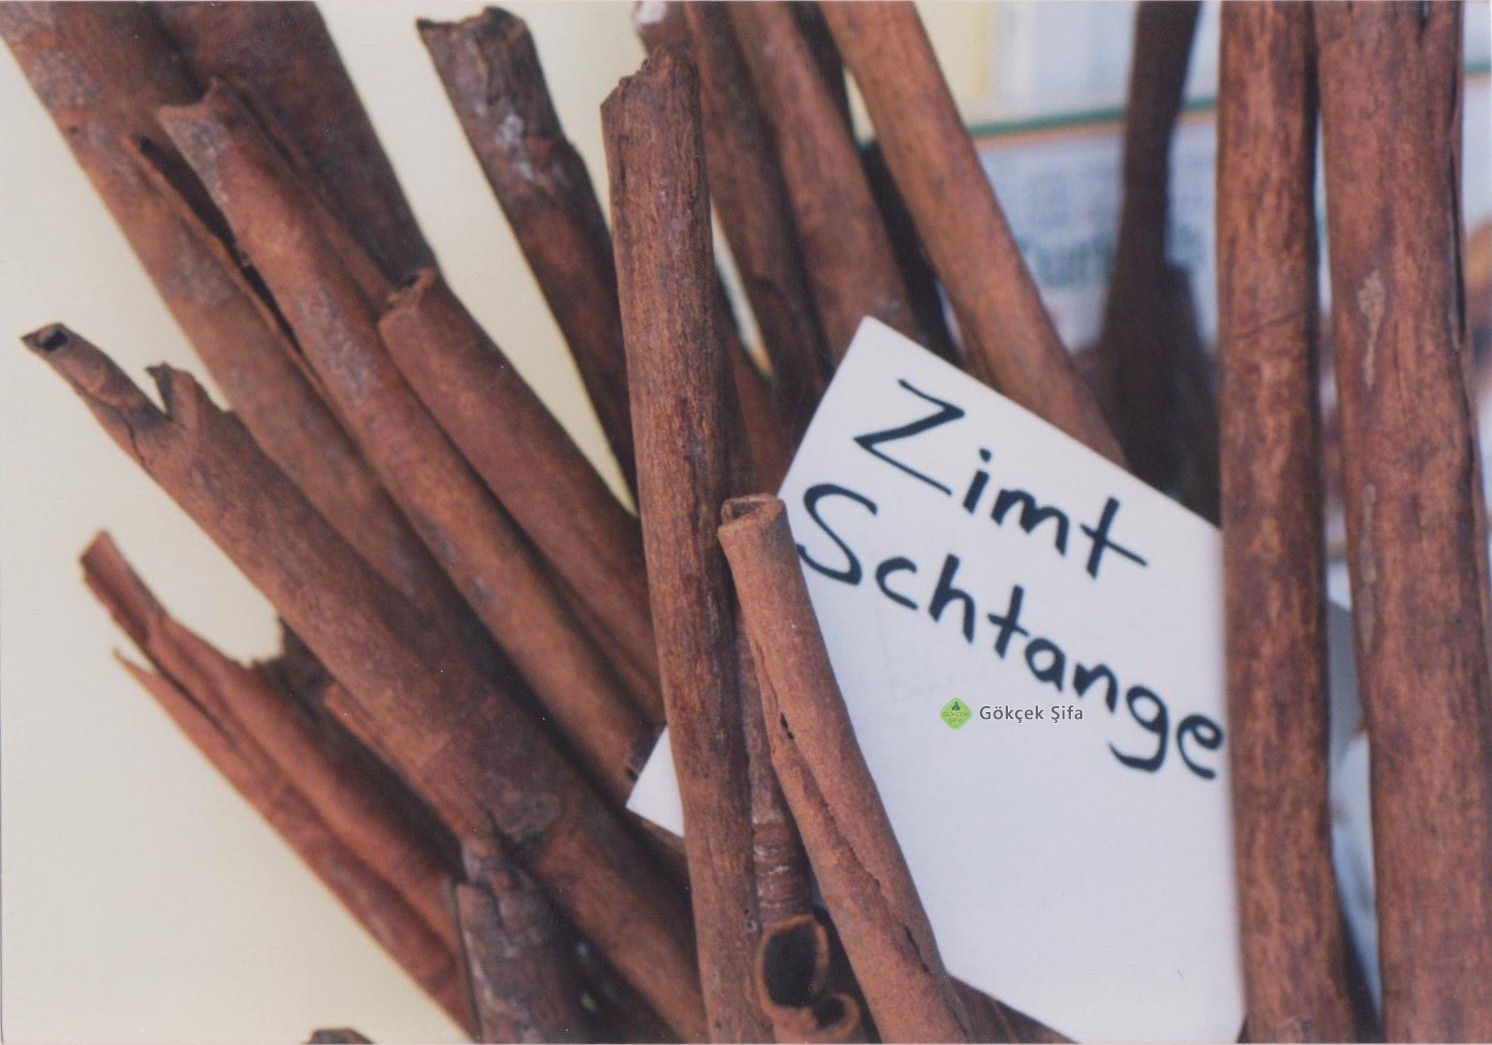
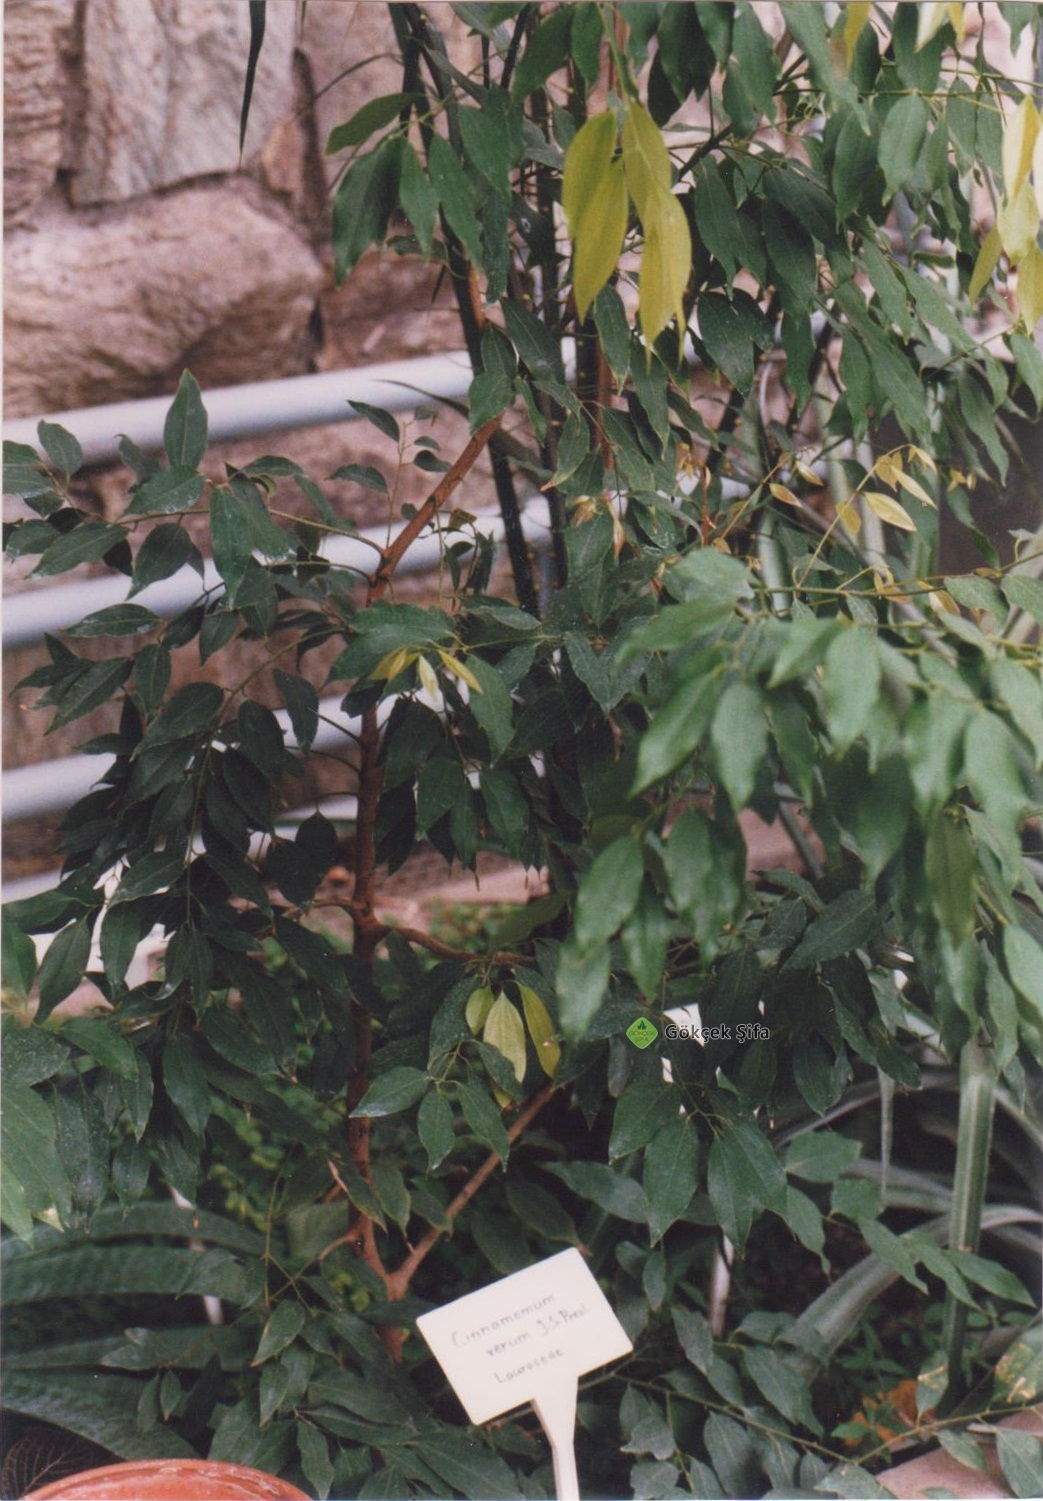
Tarçın Forte, Tarçın, Zimt, Cinnamomum verum

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Tarçın Forte, Tarçın, Zimt, Cinnamomum verum


    TARÇIN


    Ağaç | 6-12m | 3-6 Aylar | Ça,Ho,Na | Kabuk, Yaprak ve Yağı

    Tarçın, Zimt, Cinnamomum verum PREDL.
    Darçın Syn: Cainnamomum zeylanicum BLUME
    Seylan tarçını

    Familyası: Defnegillerden, Lorbeerbaugewâchse, Lauraceae

    Drugları: Tarçın kabuğu; Cainnamomi cortex
    Tarçın yağı; Cainnamomi aetheroleum
    Tarçın kabuğu çay, tentür, eter yağı ve natürel ilaç yapımında, eter yağı ise aromaterapisinde kullanılır. Nadiren tarçın yaprakları ve yaprak yağı da kullanılabilir.

    Giriş: Defnegillerin bir alt grubuna ait olan Cinnumomumgillere (Tarçın-giller) dahil olup takriben 150 tür Tarçın çeşidi mevcuttur. Bunlardan en kalitelisi Seylan Tarçını hem ilaç hem çay hem de bahat olarak kullanılır. Bunun haricinde baharat olarak kullanılan ikinci derecede kaliteli Tarçınlar mevcuttur ve bunlar; Çin Tarçını; C.aromaticum NEES, Cava Tarçını; C.burmanii BLUMES ve Saygon Tarçını; C.loureirii NEES en önemlileridir. Tarçın binlerce yıldan beri başta Güneydoğu Asya ilkelerinde kullanılmaktadır ve Avrupa’da ancak 15.yy.dan sonra kullanılmaya başlanmıştır.

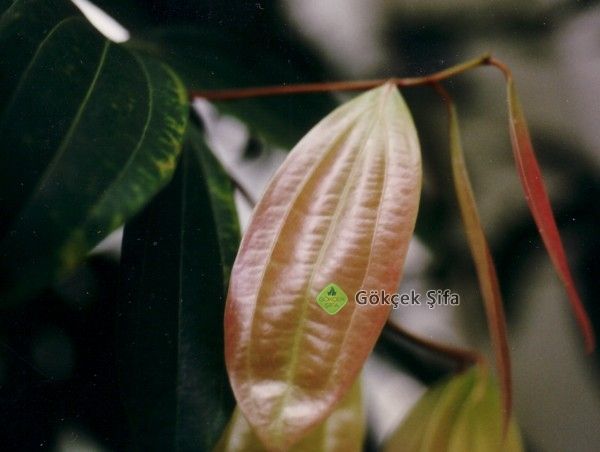
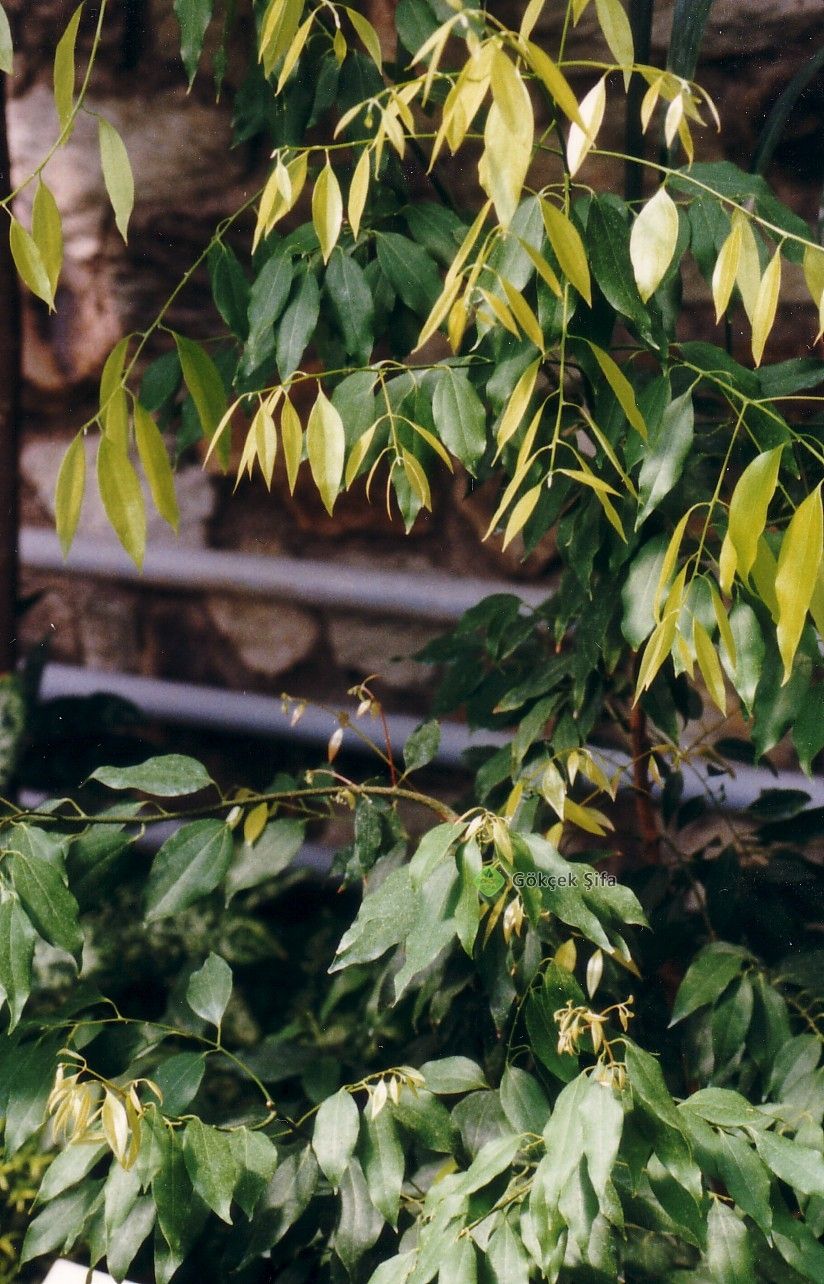
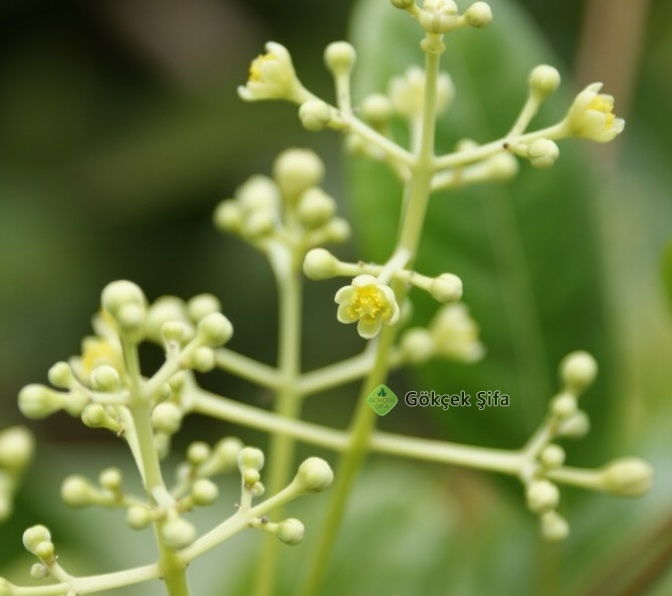
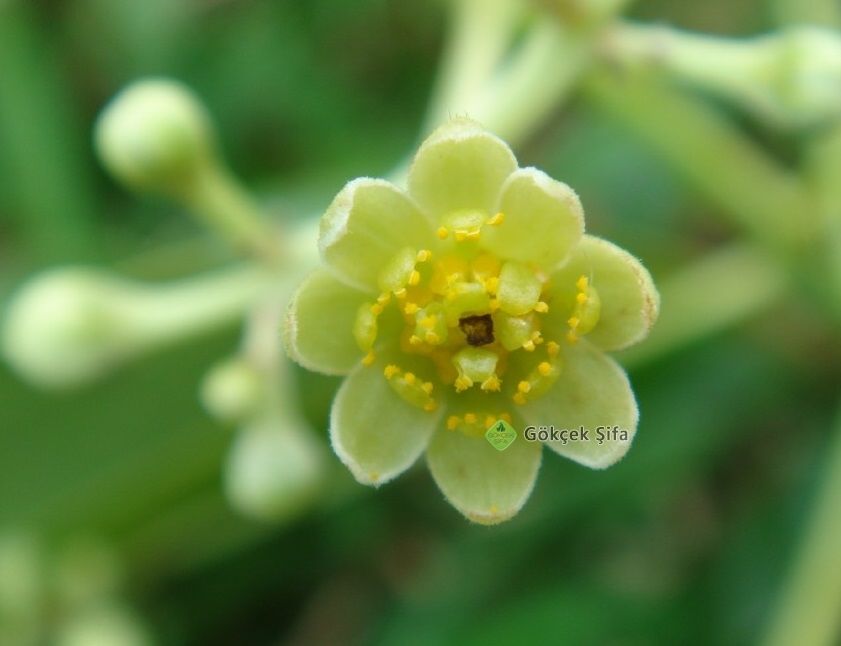
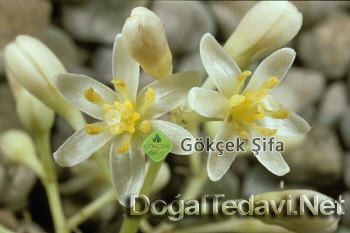
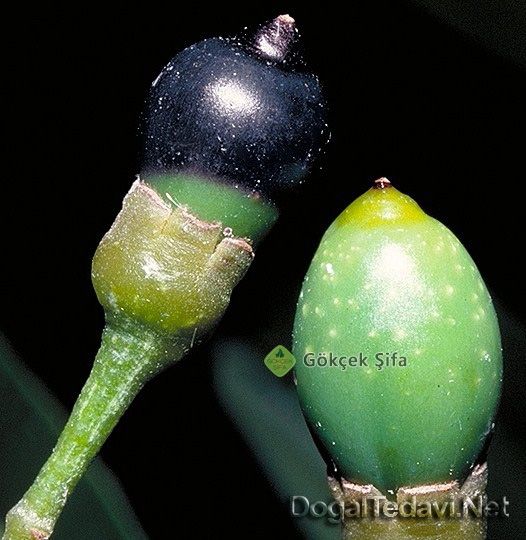
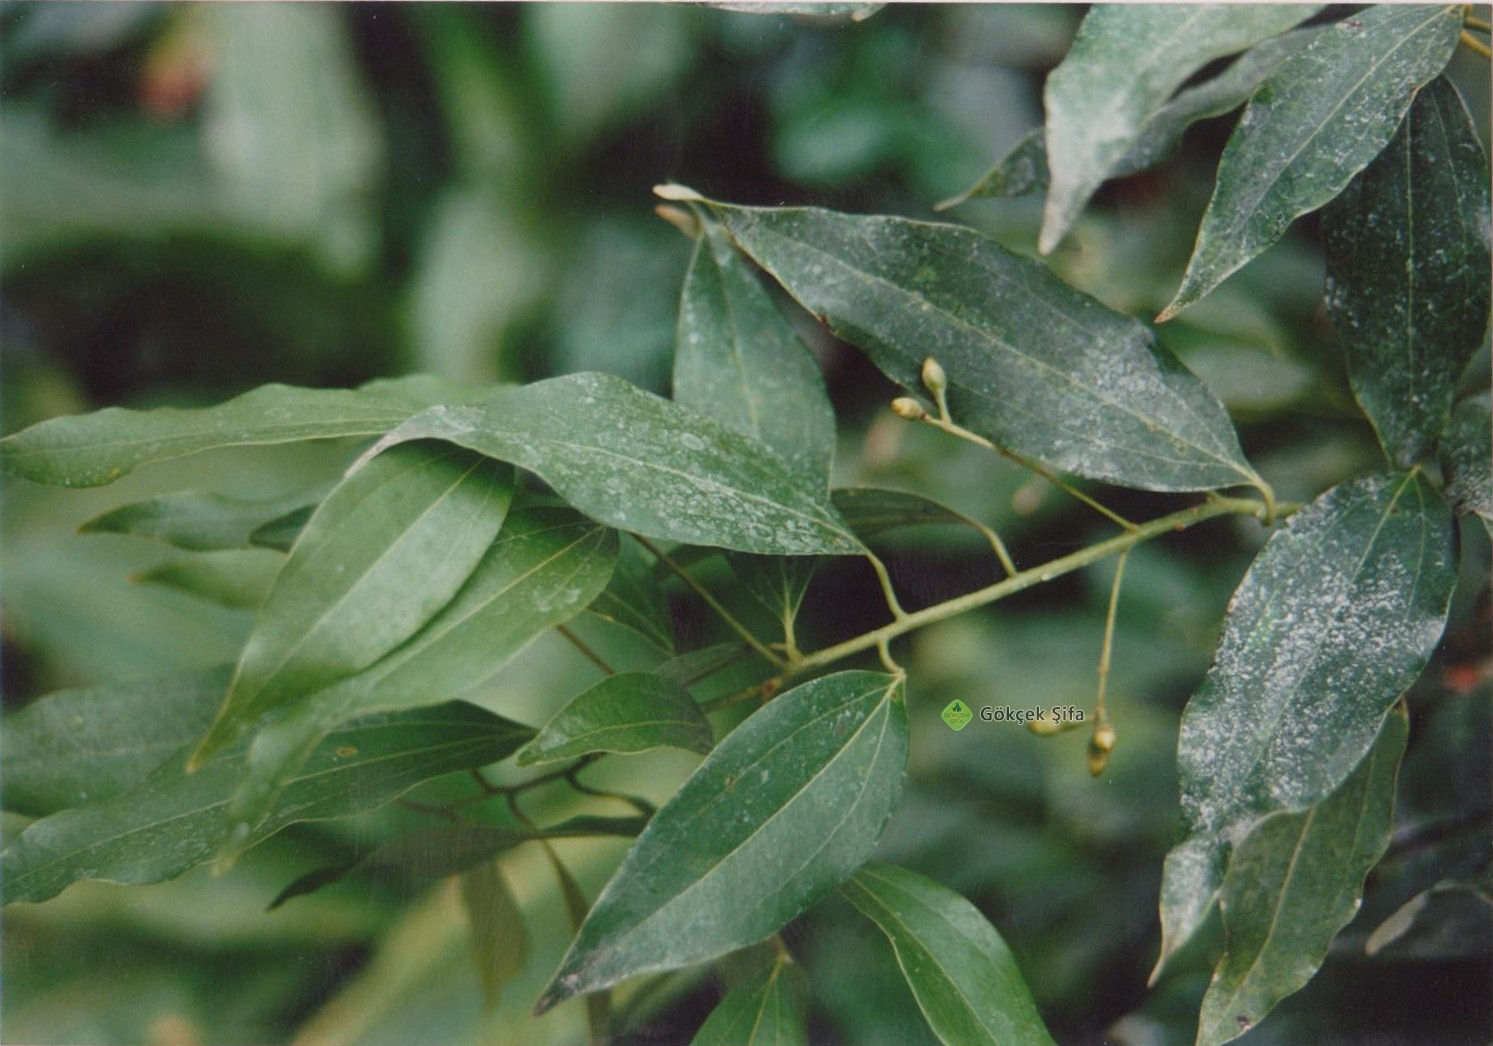
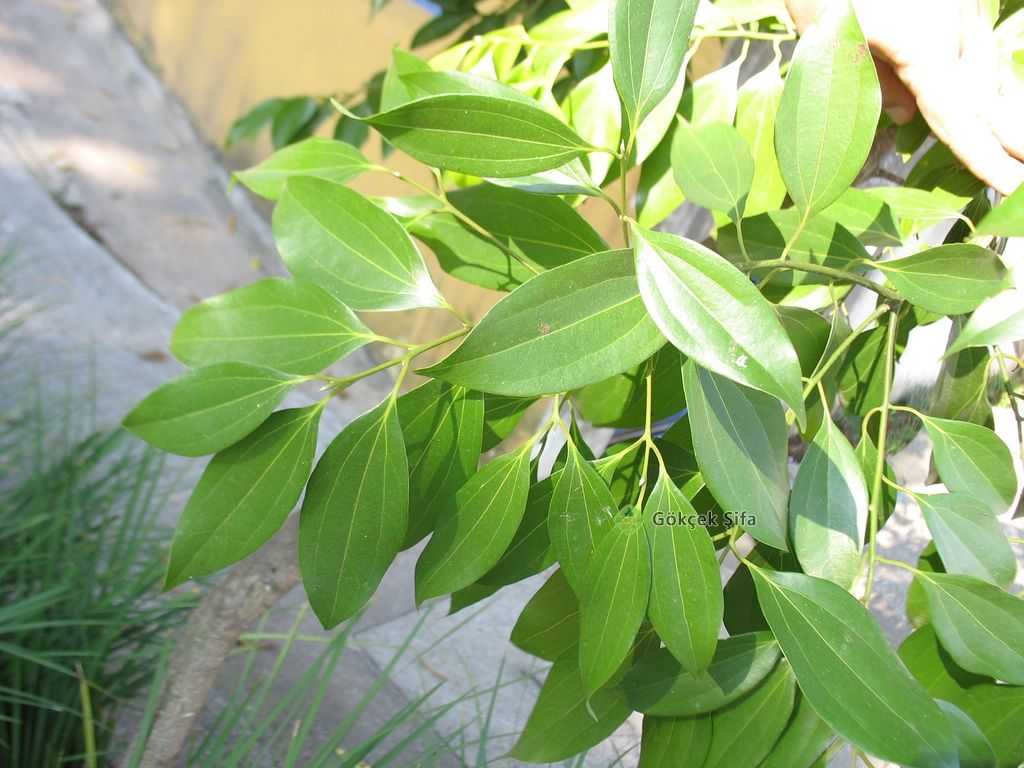
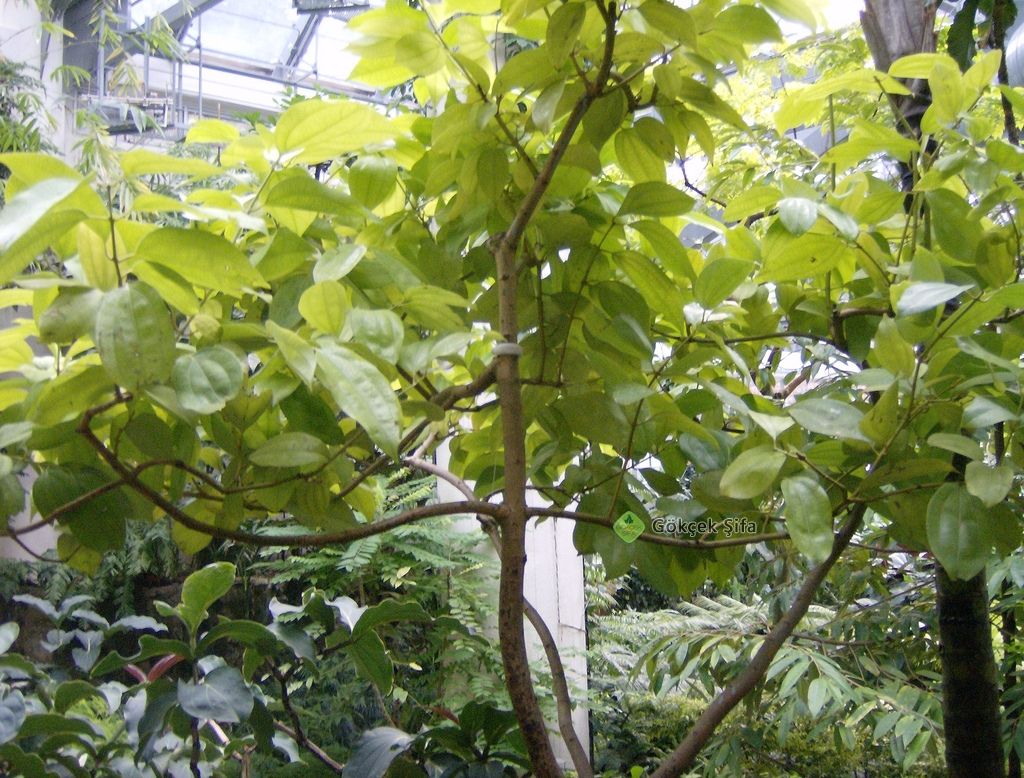
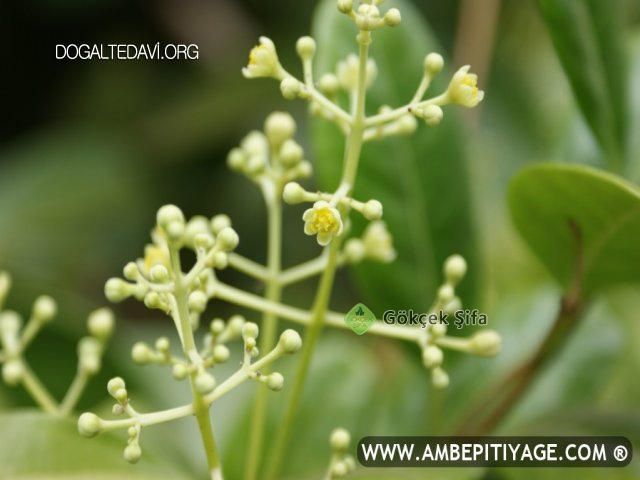
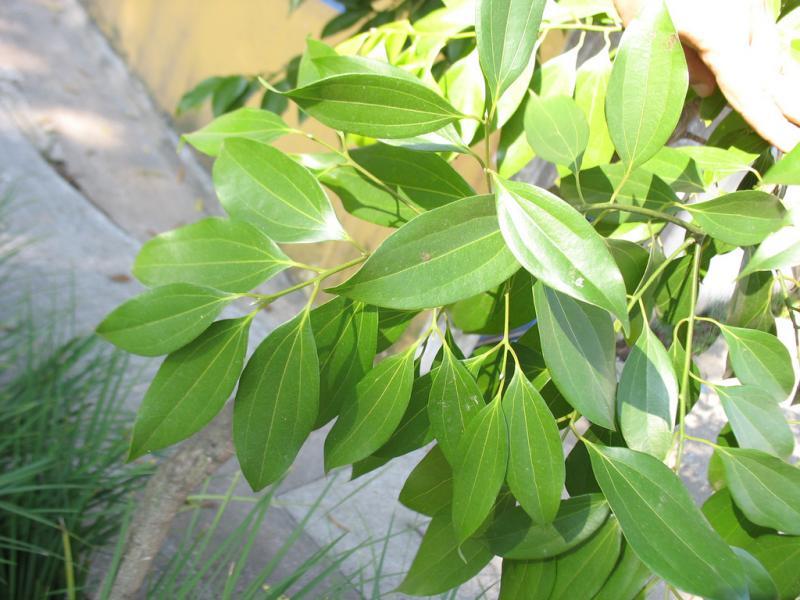
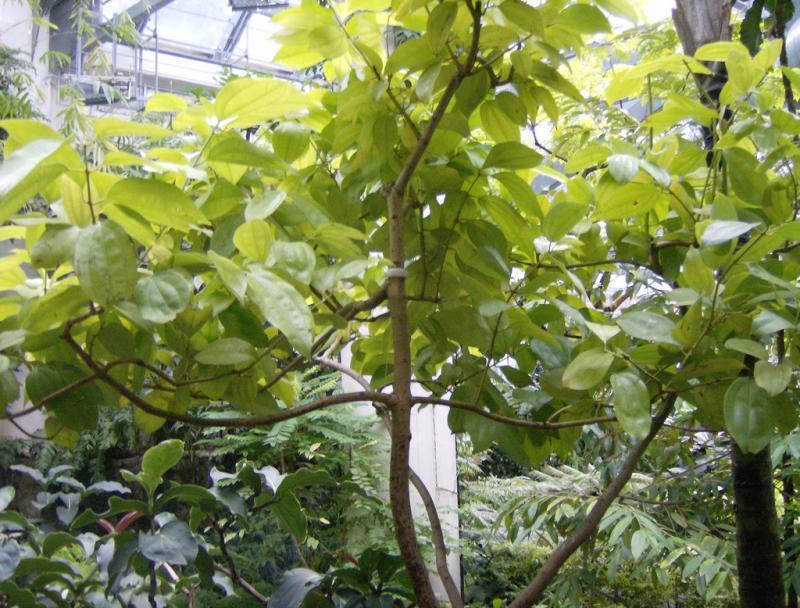
    Botanik: Tarçın 6-12cm boyunda ağaç olup geriden uzun silindir şeklinde bir gövde ve üstünde büyük bir kronu (taçı) vardır. Tarçın 2-3 yaşında iken gövdesi yerden 50cm yukarıdan kesilir ve böylece kökünden sayısız uzun şıvgınlar çıkar. Bu 2-3cm uzunluğundaki şıvgınların kabukları soyularak kurutulur. Çiçekleri ağacın tepesindeki dalların ucunda topluca bir arada bulunur ve çiçekleri oldukça küçük olup beyazımsı yeşil renklidir. Meyveleri 0,5cm çapında, yarısına kadar kaba yaprakları tarafından sarılmış ve yumurta şeklindedir. Yaprakları taze iken kırmızı, sonra kahverengimsi kırmızı ve olgunlaşınca yeşil renk alır. Yaprakları 7-15 cm uzunluğunda, 4-6cm eninde, oval veya yumurta şeklinde, kenarları bütün, üstü parlak ve koyu yeşil, altı ise mattır.

    Yetiştirilmesi: Tarçın tropik ülkelerde yetiştiğinden Türkiye’de ancak botanik bahçelerde yetiştirilebilir. Günümüzde başta Endonezya, Malezya, Madagaskar, Brezilya ve Jamaika’da kültür bitkisi olarak yetiştiril-mektedir.

    Hasat zamanı: 2-5yaşındaki Tarçın fidesinin gövdesi yerden 50cm yukarıdan kesilince bitkinin kütüğünden yetiştiği yöreye ve toprağa göre şıvgınlar çıkar. Bu şıvgınların kabukları soyulur. Kabukların dışındaki man-tarsı kabuk atılarak iç kabuklar iç içe geçirilerek kurumaya bırakılır. Seylan tarçının kabukları iç içe dizilmiş ve öylece kurutulmuştur. 0,5mm kalınlığında 15-25cm uzunluğunda açık kahverengimsi, narin ve hoş koku-ludur. Çin tarçını koyu kahverengimsi, tadı keskin, 1-3mm kalınlığında, 30-50cm uzunluğundadır.

    Birleşimi: Tarçın kabuğunun birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Eter yağı türevleri (uçucu yağlar) %1-2,5 arasında olup en önemlileri; Sinamikaldehit %65-75, Eugenel %5-10, Sinamikalkol, Sinamikasit, Cinamilasetat 0-Methoksisinamikaldehid, Kinolol, Phellandren, Pinen, Cymol ve Caryophyllen.
    b) Procyanidinler %2 arasında olup en önemlileri Procyanidin A2 ve bunun üçlü ve beşli bileşikler
    c) Diterpenler; Cinnzeylanol ve Cinnzeylanin
    d) Şeker türevlerinden Mannit içerir ve bu da %92 Xylozlar ve %8 Arabinozlardan oluşur.
    e) ayrıca musilaj, Nişasta, Fenolkarbonikasit, Klasiyumoksalat ve az miktarda β-Sitosterin

    Araştırmalar:
    1) Japonya’da Tarçın yağı ile yapılan bir dizi araştırmada (Mukherjee ve ekibi) antibakteriyel (bakterileri öldürücü) ve fungistatik (mantarları yok edici) özelliklere sahip olduğu tespit edilmiştir.
    2) Diş doktoruna gittim ve doktor önce dişimdeki bakterilere karşı an-tibiyotik (İsocillin) ve ağrı kesici (İbuflam) verdi. Bu ilaçları aldıktan sonra midem ağrımaya başladı ve aynı anda midemi üşütmemle birlikte midemden 15-20dk’da bir kramplar gelmeye ve beni rahatsız etmeye başladı. Bu rahatsızlıklardan kurtulmak için bir şeyler ararken elimde Türkiye’den gelirken getirdiğim tarçın kabuklarını fark etim ve bundan günde 5-6defa 2-3cm sakız gibi çiğnemeye başladım. Tam üç hafta boyunca çektiğim kramplı ağrılar iki günde iyileşti. (26.05.1999)

    Tesir şekli: Antibakteriyel (bakterileri öldürücü), fungustatik (mantarları yok edici), antiseptik, iç kanamaları önleyici, gaz söktürücü, ishali önleyici, antihelmintik (bağırsak kurt ve solucanlarını dökücü), vücudu ısıtıcı ve hafif cinsel gücü artırıcıdır.

    Kullanılması:
    a) Üniversite kliniklerinde yapılan araştırmalarda bakterileri öldürücü ve mantarları yokedici olduğu tesbitedilmiştir, fakat klinik araştırmaları yeterli değildir.
    b) Komisyon E’nin 01.02.1990 tarih ve 22nolu Monografi bildirisinde Tarçın kabuğu, yağı ve de ilaçlarının başta, iştahsızlık, hazımsızlık nedeni ile hafif kramplı mide-bağırsak rahatsızlıklarını, tıkanma ve şişkinliğe karşı kullanılır.
    c) Homeopati’de Tarçın tentürü iç kanamalara, burun kanamasına karşı kullanılır.
    d) Aromatedavisi; Tarçın yağı (uçucu yağı) dermansızlık, ağrı ve yutak iltihaplanması, dişeti kanaması, üşütme, grip, bağırsak enfeksiyonu, mide ve bağırsak krampları üşütmesi ve sindirim bozukluklarına karşı kullanılır.
    e) Halk arasında iştahsızlık, mide-bağırsak krampları, bağırsak mantarı, mide üşütmesi, hazımsızlık, şişkinlik, ishal, grip, dişeti ve ağız içi iltihap ve kanamalarına karşı kullanılır.

    Açıklama: Tarçın alırken Seylan tarçını mı, Çin tarçını mı olduğuna dikkat edilmelidir. Seylan tarçını birinci kalite Tarçın olup hem tedavi hem çay hem de baharat olarak kullanılırken Çin tarçını sadece baharat olarak kullanılabilir. Türkiye’de genellikle Tarçın deyince Çin tarçını veya kalitesi düşük tarçınlar satılmaktadır. Kaliteli tarçın kabuk halinde bulunan tarçındır. Bağırsak florası için en ideal bitkilerden biri de Tarçın kabuğudur. Çünkü bağırsaklarda artan mantarları ve Zararlı bakterileri Tarçının birleşimindeki maddeler yok eder. Mide-bağırsak üşütmelerine karşı da en etkili şifalı bitkilerdendir. Çünkü mide ve bağırsakları ısıtarak üşütmeyi önler. Şayet dilinizin rengi beyaz ise bu iki nedenden olabilir; şayet kısmen beyazsa mide-bağırsak üşütmüşsünüz demektir. Eğer dil tamamen beyaz ise bu da bağırsakların tamamen mantarlar tarafından kaplandığını gösterir.

    Çayı: tarçın tozundan 1 kahve kaşığı demliğe konur ve üzerine 300-400ml kaynar su ilave edilir. 5-10dk demlenmeye bırakıldıktan sonra süzülerek içilir.

    Çay Harmanları:

    Gökçek Mide çayı;
    >30 gr Rezene tohumu
    >20 gr Melek otu kökü
    >20 gr Kantaron otu
    >20 gr Oğulotu
    >10 gr Tarçın

    Gökçek Mide ve bağırsak çayı;
    >30 gr Rezene tohumu
    >20 gr Kimyon tohumu
    >20 gr Kakule
    >20 gr Kılıç otu
    >10 gr Tarçın kabuğu

    Gökçek Mide çayı (Hazımsızlık, Şişkinlik, Mide asidi yetmezliği)
    >30g Kantaron otu
    >30g Nane yaprağı
    >30g Tarçın kabuğu
    >10 Çentiyan

    Gökçek Mide ve Bağırsak çayı (tıkanma, şişkinlik, ve sinirsel mide ağrısı);
    >30 gr Kakule
    >30 gr Kimyon tohumu
    >30 gr Melek otu kökü
    >10 gr Tarçın kabuğu

    Gökçek Mide ve Bağırsak çayı (tıkanma, şişkinlik, ve sinirsel mide ağrısı);
    >30 gr Rezene tohumu
    >30 gr Kimyon tohumu
    >30 gr Melek otu kökü
    >10 gr Tarçın kabuğu

    Gökçek Mide ve Bağırsak çayı (şişkinlik,tıkanma ve sinirsel mide ağrısı)
    >30 gr Anason tohumu
    >30 gr Kimyon tohumu
    >30 gr Rezene tohumu
    >10 gr Tarçın kabuğu

    Gökçek iştah çayı (tıkanma, şişkinlik, asit yetersizliği);
    >20 gr Pelin otu
    >20 gr Mübarek otu
    >20 gr Kantaronotu
    >10 gr Tarçın kabuğu
    >10 gr Turunç kabuğu
    >10 gr Nane yaprağı
    >10 gr Acı yonca yaprağı

    Gökçek iştah çayı (mide rahatsızlıklarından tıkanma, şişkinlik ve asit yetersizliği);
    >20 gr Pelin otu
    >20 gr Kantaron otu
    >20 gr Turunç kabuğu
    >10 gr Çentiyan kökü
    >10 gr Acı yonca yaprağı
    >10 gr Tarçın kabuğu

    Aromaterapi: Tarçın kabuklarının su buharı ile damıtılması (destilasyonu) ile eter yağı (uçucu yağ) elde edilir ve bu yağ Aroma tedavisinde kullanılır.

    Homeopati’de: Tarçın kabukları toz haline getirildikten sonra 20gr bir şişeye konur ve üzerine 80ml %70’lik alkol ilave edilir. 4-6hafta güneş ışınlarından uzakta muhafaza edilir ve sonra süzülerek Homeopati’de <> adı ile anılan tentür elde edilir. bu tentürden günde 3-4defa 10-15damla 4-6hafta süreyle alınır.

    Yan tesirleri: Tarçın kabuğunun bilinen bir yan tesiri yoktur fakat Tarçın eter yağının tarife uygun kullanılması gerekir. Aksi halde terleme, kalp çarpıntısı ve ishale sebep olabilir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        Alzheimer Hastalığının Tarçın ile tedavisi
        Cinnamomum
        verum J. Presl. Kabuk esansiyel yağı: antikolinesteraz, anti-BACE1 ve nöroprotektif aktivitenin in vitro araştırılması


        Mina Saeedi , 1, 2 Aida Iraji , 3, 4 Yasaman Vahedi-Mazdabadi , 2 Atiyeh Alizadeh , 1 Najmeh Edraki , 5 Omidreza Firuzi , 5 Mehdieh Eftekhari , 6 ve Tahmineh Akbarzadeh 2, 7
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        Bu makale düzeltildi. Bkz . BMC Complement Med Ther. 29 Kasım 2022; 22: 314 . İlişkili Veriler

        Veri Kullanılabilirliği Bildirimi
        Git: Soyut

        Arka plan


        Cinnamomum verum J. Presl. (Lauraceae), Myrtus communis L. (Myrtaceae), Ruta graveolens L. (Rutaaceae), Anethum graveolens L. (Apiaceae), Myristica fragrans Houtt. (Myristicaceae) ve Crocus sativus L. (Iridaceae) , İran Geleneksel Tıbbında (ITM) inhalasyon yoluyla hafızanın iyileştirilmesi için önerilmiştir . Bu bağlamda, bu bitkilerden uçucu yağlar (EO'lar) elde edilmiş ve kolinesteraz (ChE) inhibitör aktivitesi açısından değerlendirilmiştir, çünkü ChE inhibitörleri Alzheimer hastalığının (AD) tedavisinde mevcut ilaçlardır.

        Yöntemler
        Araştırılan bitkilerden elde edilen EO'lar, değiştirilmiş Ellman yöntemine dayalı olarak asetilkolinesterazı (AChE) ve butirilkolinesterazı (BChE) in vitro inhibe etme potansiyelleri açısından değerlendirildi. En güçlü EO, beta-sekretaz 1 (BACE1) inhibitör aktivitesi ve nöroprotektivitesinin araştırılması için adaydı. Sonuçlar


        Tüm EO'lar arasında C. verum , sırasıyla 453.7 ve 184.7 µg/mL'lik IC50 değerleri ile AChE ve BChE'ye karşı en güçlü aktiviteyi gösterdi . Ayrıca 500 ve 100 mg/mL konsantrasyonda BACE1'e karşı sırasıyla %62,64 ve %41,79 inhibisyon gösterdi. Bununla birlikte, PC12 hücrelerinde β-amiloid (Aβ) kaynaklı nörotoksisiteye karşı hiçbir nöroprotektif potansiyel göstermedi. Ayrıca, C. verum EO'nun kimyasal bileşiminin tanımlanması, gaz kromatografisi-kütle spektrometrisi (GC-MS) analizi ve ana bileşen yoluyla elde edildi; ( E )-sinnamaldehit, %68.23 olarak tespit edildi.

        Çözüm
        C. verum EO'nun güçlü BChE inhibe edici aktivitesi, ilerlemiş AD'li hastaların yönetimi için tarçın bazlı diyet takviyelerinin geliştirilmesinde düşünülebilir.

        Anahtar Kelimeler: BACE1, Kolinesteraz, Uçucu yağ, İnhibitör aktivite, Nöroprotektivite
        Git: Arka plan


        Alzheimer hastalığı (AD), yaşlı insanlarda bunamanın ana nedeni olarak kabul edilen kronik bir nörodejeneratif hastalıktır. Hastalık Kontrol ve Önleme Merkezlerinin (CDC) en son verilerine göre, 2019'da 121.499 kişi Alzheimer nedeniyle öldü. 65 yaşın üzerindeki yaklaşık 9 kişiden 1'i (%10,7) AD demansından muzdariptir ve 2000 ile 2019 yılları arasında Alzheimer hastalığından ölenler olmuştur. %145 artarak iki kattan fazla arttı. 2021'de AD veya diğer bunama türleri olan hastalar için toplam maliyetin 321 milyar dolar olduğu tahmin ediliyor ( https://www.alz.org/media/Documents/...nd-figures.pdf ). Artan AD hasta sayısı ve hastalığın ekonomik yükü, onu 21. yüzyılın en büyük zorluklarından biri haline getirdi.

        Günümüzde multifaktöriyel doğası nedeniyle AD tedavisi için kesin bir tedavi yoktur. Asetilkolinin (ACh) sinaptik düzeylerinde azalma [ 1 ] , β-amiloid peptitin (Aβ) anormal birikimi [ 2 ] , hücre içi hiper-fosforillenmiş tau nörofibriler yumaklar [ 3 ] ve oksidatif strese yol açan mitokondriyal disfonksiyon [ 4 ] bilinmektedir AD'nin ana ayırt edici özellikleri olarak. Bu açıdan, tek hedefli ilaç tedavileri başarılı olamamıştır [ 5 ] ve son zamanlarda AD'de yer alan farklı mekanizmalara dayanan çok hedefli terapötik ajanların geliştirilmesi büyük ilgi çekmiştir [6,7 ] .]. Seçici ligandlara dayalı kullanım stratejileri, ilaç keşfi gelişmelerinde ana araç olarak bilinmesine rağmen, AD gibi çok faktörlü hastalıklarda etkili olmamıştır. Bu amaçla, bileşenlerin bir karışımının değerli biyolojik aktivitelerinden yararlanan fitoterapi [ 8 ] ilgi odağı olmuştur. AD tedavisinde kullanılan bitkisel ilaçlara odaklanıldığında [ 9 ] esansiyel yağların (EO'lar) çok etkili olduğu bulunmuştur çünkü çeşitli in vitro, in vivo ve klinik deneyler düşük moleküler ağırlık ve yüksek hidrofobiklik nedeniyle etkinliklerini onaylamıştır. kan-beyin bariyerini (BBB) ​​kolayca geçmek için [ 10 , 11 ].

        EO'lar, çok çeşitli biyolojik aktivitelere sahip uçucu bileşiklerin karmaşık bir karışımını içeren, doğal olarak oluşan ikincil metabolitlerdir [ 12 , 13 ].

        Çeşitli çalışmalar, EO'ların kolinesteraz inhibitör (ChEI) aktivitesini [ 13 ] ve nöroprotektivitesini [ 14 , 15 ] doğrulamıştır. Ek olarak, EO'ların BACE1 inhibitör aktivitesi literatürde belgelenmiştir. Enzim, nörotoksik β-amiloid peptidin (Aβ) (βA) oluşumunda ve birikmesinde kilit bir rol oynar. Örneğin, Lavandula luisieri EO, enzimatik ve hücresel analizlerde [ 16 ] BACE1'i etkili bir şekilde inhibe edebildi ve Lavandula angustifolia EO'nun da βA agregasyonunu inhibe ettiği bildirildi [ 17 ]. L. angustifolia ve Rosmarinus officinalis'in etkinliğiAD tedavisindeki EO'lar klinik olarak araştırılmış ve kognitif bozuklukta büyük bir iyileşme bildirilmiştir [ 17 , 18 ].

        Cinnamomum verum J. Presl. (Lauraceae), Myrtus communis L. (Myrtaceae), Ruta graveolens L. (Rutaaceae), Anethum graveolens L. (Apiaceae), Myristica fragrans Houtt. (Myristicaceae) ve Crocus sativus L. (Iridaceae) İran geleneksel tıbbında (ITM) hafıza kaybının tedavisi için geleneksel olarak tavsiye edilmiştir [ 19 ]. Öte yandan, bilişsel sorunların iyileştirilmesi için farmakolojik olmayan yaklaşımlar geliştirilmiştir [ 20 , 21 ] ve bu açıdan aromaterapi yaygın olarak güçlü bir araç olarak kabul edilmiştir [ 22 ]]. Farklı çalışmalarda, terapilerin kombinasyonu, AD'li hastalarda hafızayı, yaşam kalitesini ve diğer komplikasyonların tedavisini iyileştirmede önemli sonuçlar göstermiştir [ 23 , 24 ]. Burada AD [ 25 – 32 ] tedavisi için bitkisel ilaçların geliştirilmesine yönelik çalışmamızın devamında, Cinnamomum verum J. Presl., Myrtus communis L., Ruta graveolens L., Anethum graveolens L' nin anti-ChE aktivitesi ., Myristica fragrans Houtt., ve Crocus sativus L. EO'ları değerlendirildi. Bu bağlamda, en güçlü EO ( C. verum), nöroprotektivite ve BACE1 inhibe edici aktivite dahil olmak üzere AD ile ilgili diğer biyolojik aktivitelerin araştırılması için adaydı.

        Git: Yöntemler
        Bitkiler
        C. verum kabuğu (1500 g), M. communis'in yaprakları (1500 g), R. graveolens'in toprak üstü kısımları (1500 g), A. graveolens tohumları (1500 g), M. fragrans'ın tohum çekirdeği ( 1500 g) ve C. sativus L.'nin (100 g) çiçekleri 2018 yılında Tahran'daki (İran) yerel pazardan satın alınmıştır. Tahran Tıp Bilimleri Üniversitesi Eczacılık Fakültesi herbaryumunda teşhis edilerek depolanmıştır. sırasıyla pmp-910, pmp-423, pmp-362, pmp-1609, pmp-1608 ve pmp-570 kupon numaralarıyla Profesör Gholamreza Amin tarafından. Bitkilerin tanımlanması, tanımlanan herbaryum ve flora örnekleri ile karşılaştırılarak gerçekleştirilmiştir.

        Uçucu yağların elde edilmesi
        C. verum (1000 g), M. communis (1000 g), R. graveolens (1000 g), A. graveolens (1000 g), M. fragrans (1000 g) ve C. sativus'un (90 g ) EO'ları ) Clevenger tipi aparatta genel hidro-damıtma kullanılarak elde edildi. Toz bitki materyali (250 gr) 2 L kapasiteli Clevenger aparatına aktarıldı ve yuvarlak balona distile su eklendi. C. sativus durumunda olduğu unutulmamalıdır., düşük miktarlarda bitki materyali kullanılmış ve 90 g toz bitki 500 mL'lik yuvarlak bir şişeye konulmuştur. Hidro-damıtma 5-6 saat süreyle gerçekleştirildi ve yağ yoğunlaşmayı durdurduğunda durduruldu. Bundan sonra damıtılmış yağ toplandı, susuz sodyum sülfat üzerinde kurutuldu ve ardından 4 °C'de sıkıca kapatılmış karanlık bir şişede saklandı. Tüm EO'ların yoğunluğu da hesaplandı.

        Biyolojik aktiviteler
        In vitro AChE ve BChE inhibitör aktivite testi
        Modifiye edilmiş Ellman's kullanılarak asetilkolinesteraz (AChE, EC 3.1.1.7, Tip VS, liyofilize toz, elektrikli yılan balığından, 1000 birim) ve butirilkolinesteraz (BChE, EC 3.1.1.8, at serumundan) için in vitro anti-ChE aktivite deneyleri yapıldı. yöntem [ 33 ]. Kabul edilebilir enzim inhibe edici aktivite (%20-80) elde etmek için, EO'ların (10 mg/mL) stok çözeltileri DMSO içinde hazırlandı ve numunelerin dört farklı nihai konsantrasyonu (63.5) elde etmek üzere bir DMSO ve metanol karışımı ile seyreltildi. , 125, 250, 500 µg/mL), 50/50 DMSO/metanol nihai oranı elde edilirken. Her kuyu potasyum fosfat tamponu (KH 2 PO 4 / K 2 HPO 4,0,1 M, pH 8) (50 µL), yukarıda açıklandığı gibi hazırlanan numune (25 µL) ve potasyum fosfat tamponunda (pH = 8) 0,22 Birim/mL nihai konsantrasyon ile AChE (25 µL). Oda sıcaklığında 15 dakika önceden inkübe edildiler ve ardından karışıma DTNB (5,5'-ditio-bis(2-nitrobenzoik asit) (125 uL, 3 mM potasyum fosfat tamponunda, pH 8) eklendi. Substrat (ATCI (asetiltiyokolin iyodür, damıtılmış suda 3 mM, 25 uL) ilave edildikten sonra, absorbanstaki değişiklikler 405 nm'de spektrometrik olarak ölçüldü. enzimatik reaksiyon Aynı koşullar altında inhibitör olmadan bir negatif kontrol de gerçekleştirildi ve pozitif kontrol olarak donepezil kullanıldı .değerler, inhibisyon eğrilerinin %'sine karşı log konsantrasyonundan grafiksel olarak belirlendi. Tüm deneyler üç kopya halinde gerçekleştirildi. BChE inhibisyon tahlili aynı yöntemde gerçekleştirildi.

        Nöroproteksiyon testi
        Aβ 25−35'e maruz kalan PC12 nöronal hücreleri üzerindeki C. verum EO'nun nöroprotektif aktivitesi, daha önce açıklanan bir yönteme göre MTT indirgeme testi kullanılarak tahmin edildi [ 34 ]. PC12 (sıçan feokromositoma) hücreleri, Profesör Lloyd A. Greene'den (Patoloji ve Hücre Biyolojisi Bölümü, Columbia Üniversitesi, New York, NY) cömert bir hediyeydi. PC12 hücreleri, kollajen kaplı 96 kuyulu bir plaka üzerine kaplandı (5 x 10⁵ hücre /mL, her kuyuda 100 uL) ve 37 °C'de 48 saat inkübe edildi. Test EO'nun farklı konsantrasyonları her kuyucuğa eklendi, fazladan 3 saat inkübe edildi ve ardından Aβ 25−35(5 uM, 10 uL) her kuyucuğa eklendi. 24 saat sonra ortamın 90 uL'si, fenol kırmızısı içeren RPMI içinde çözülmüş 20 uL 0,5 mg/mL MTT ile değiştirildi ve 2 saat 37 °C'de inkübe edildi. Daha sonra formazan kristalleri, DMSO (200 uL) içinde çözündürüldü ve bir Bio-Rad mikroplaka okuyucu kullanılarak absorbans (570 nm) ölçüldü. Referans bileşik olarak kafeik asit kullanıldı.

        In vitro anti-BACE1 aktivite testi
        C. verum EO'nun ön anti-BACE1 aktivitesi, FRET (floresan rezonans enerji transferi) enzim inhibisyonu ile gerçekleştirildi. Deney, referans bileşik [ 34 , 35 ] olarak OM99-2 kullanılarak, daha önce bildirilen prosedürler izlenerek ve üreticinin talimatlarına göre (Invitrogen; eski Pan Vera şirketi, Madison, WI) yapıldı . Kısaca, C. verum'un stok çözeltileriEO, DMSO'da hazırlandı. Her numune, test numunesinin uygun konsantrasyonunu hazırlamak için analiz tamponunda ayrıca seyreltildi. DMSO'nun nihai konsantrasyonu %6'dır (h/h). Substrat (10 uL), siyah 96 oyuklu bir mikroplakanın her bir oyuğunda test EO'nun (10 uL) farklı konsantrasyonlarına ilave edildi ve hafifçe karıştırıldı. Daha sonra, reaksiyonu başlatmak için BACE1 (10 uL) eklendi. Reaksiyon karışımları, karanlıkta 90 dakika 25 °C'de inkübe edildi ve reaksiyonu durdurmak için sodyum asetat (2.5 M, 10 uL) eklendi. Son olarak, enzimatik ürünün floresan yoğunluğu, BMG, LABTECH, Polar star, Almanya kullanılarak 544 nm eksitasyon ve 590 nm emisyon dalga boylarında ölçülmüştür.

        Gaz kromatografisi (GC)
        C. verum EO'da ( E )-sinnamaldehit miktarının tayini, GC analizi çalıştırılarak oluşturulan kalibrasyon eğrileri kullanılarak harici standart yöntemle yapıldı. Bu bağlamda, C. verum EO ve ( E )-sinnamaldehitin (%99 saflık) (Sigma-Aldrich, Saint Louis, ABD) GC analizi, alev iyonlaşma detektörü (FID) olan bir Agilent 7890 A GC cihazında gerçekleştirildi. (Agilent Technologies, CA, ABD). Silika kılcal kolon, 19.091 J-433 Agilent (30 x 0.25 mm ID, film kalınlığı: 0.25 um; CA, ABD) idi ve taşıyıcı gaz olarak 25 mL/dak akış hızında saf nitrojen (%99.999) uygulandı. EO numunesi %20 n olarak enjekte edildi- 1:60 bölünmüş oran ile heksan solüsyonu (1.0 uL). İlk fırın sıcaklığı 3 dakika izotermal olarak 60 °C'de tutuldu ve 20 dakika boyunca 6 °C/dk hızında maksimum 240 °C'ye yükseltildi. Ayrıca, kalibrasyon eğrisini elde etmek için 1000, 2500, 5000, 10.000, 25.000 ve 50.000 ug/mL'lik çeşitli konsantrasyonlarda ( E )-sinnamaldehitin (1.0 uL) n -heksan çözeltisi enjekte edildi.

        Gaz kromatografisi-kütle spektrometrisi (GC-MS)
        C. verum EO'nun analizi, MS-5975 C MSD (Agilent Technologies, CA, ABD) ile birlikte bir alev iyonlaşma detektörü (FID) içeren bir Agilent 7890 A GC cihazında gerçekleştirildi. Silika kılcal kolon, HP-5ms Agilent (30 x 0.25 mm ID, film kalınlığı: 0.25 um; CA, ABD) idi ve taşıyıcı gaz olarak 1 mL/dakika akış hızında saf helyum (%99.999) uygulandı. Ayrıca, enjeksiyon hacmi, 1:5 bölünmüş oran ile 1.0 uL idi. Başlangıç ​​fırın sıcaklığı 75 °C'de 5 dakika izotermal tutulmuş ve 20 °C dk- 1 oranında 280 °C'ye yükseltilmiştir.25 dakika Aynı şekilde, MS sistemi 70 eV iyonizasyon enerjisinde dört kutuplu bir detektör ile elektron iyonizasyon (EI) moduna ayarlanmıştır. Transfer hattı ve iyon kaynağı sıcaklıkları sırasıyla 285 ve 200 °C'ye ayarlanmıştır. EO'nun kimyasal bileşimini belirlemek için bileşenlerin Kovats alıkonma endeksleri, EO'dan sonra enjekte edilen bir n -alkan merdiveninin alıkonma süreleri kullanılarak hesaplandı ve kütle spektrumları, bilgisayar kütüphanesinde bulunan spektrumlarla karşılaştırıldı.

        Moleküler yerleştirme çalışması
        Altın moleküler yerleştirme yazılımı, C. verum kabuğu EO'nun yedi ana bileşeninin olası bağlanma bölgesini belirlemek için yerleştirme çalışmaları için kullanıldı . AChE (PDB ID: 4EY7), BChE (PDB ID: 4BDS), BACE1 (PDB ID: 1W51), MAO-A (PDB ID: 2Z5X) ve MAO-B'nin (PDB ID: 2XFN) kristal yapıları alınmıştır. RCSB-PDB'den ( http://www.rcsb.org ). Her kod için, su molekülleri ve ortak kristalize ligandlar reseptörden çıkarıldı ve ortak kristalize inhibitör, proteini hazırlamak için ayrı olarak tutuldu. in silico için seçilmiş bileşiklerdeğerlendirmeler hyperchem kullanılarak çizilmiş ve MM+ ve AM1 algoritmaları kullanılarak enerji minimizasyonuna tabi tutulmuştur. Yerleştirme işlemi için enzimlerin bağlanma bölgesi, doğal ligandlar kullanılarak tanımlandı. Docking analizleri için ChemScore fonksiyonlu GOLD docking programı kullanıldı. Diğer tüm seçenekler varsayılan olarak ayarlandı. En yüksek puan bağlama pozları daha fazla analiz için kullanıldı. Protein-ligand etkileşimleri, Discovery Studio Visualizer ile analiz edildi.

        istatistiksel analiz
        İstatistiksel analiz yapmak için GraphPad Prism yazılımı kullanıldı. Veri karşılaştırmaları, post hoc test olarak Tukey'nin çoklu karşılaştırmaları ile tek yönlü varyans analizi (ANOVA) ile gerçekleştirilmiştir. P değerleri < 0.05 istatistiksel olarak anlamlı kabul edildi.

        Git: Sonuçlar
        C. verum , M. communis , R. graveolens , A. graveolens , M. fragrans ve C. sativus'tan elde edilen EO'lar sırasıyla koyu sarı, açık sarı, koyu sarı, açık krem, renksiz ve sarı yoğunluğa sahip olmuştur. 0,9766, 0,8592, 0,6568, 0,8996, 0,8422 ve 0,9320 g/ cm3 . Ayrıca ekstraksiyon verimleri sırasıyla 0,68 (6,8362 g), 0,43 (4,2960 g), 0,06 (0,6568 g), 0,90 (8,9960 g), 0,08 (0,8422 g) ve %0,52 (0,4660 g) olarak hesaplanmıştır.

        EO'ların in vitro anti-ChE aktivitesi
        Tüm EO'lar, donepezil ile karşılaştırılarak AChE ve BChE inhibitör aktiviteleri açısından değerlendirildi (Tablo 1), değiştirilmiş Ellman'ın yöntemine göre. Tabloda görüldüğü gibi 1, C. verum ve M. communis EO'ları , sırasıyla 453.7 ve 405.1 µg/mL IC50 değerleri ile anti-AChE aktivitesi gösterdi . Diğer EO'lar, AChE'ye karşı aktif değildi (IC50 >  500 µg/mL). Anti-BChE aktivitesi durumunda, çoğu EO'nun aktif olduğu bulundu ve C. verum , M. communis , R. graveolens ve A. graveolen EO'ları 184.7, 431.5, 333.1 ve 335.7 µg IC50 değerleri ile BChE'yi inhibe etti. /mL sırasıyla. Ancak M. fragrans ve C. sativus aktivite göstermemiştir. EO'lar arasında, C. verum'un anti-BChE aktivitesikabuk EO önemliydi, bu nedenle AD'de yer alan ileri biyolojik çalışmaların değerlendirilmesi için seçildi. Ayrıca kimyasal bileşimi GC-MS ile analiz edildi. tablo 1


        AChE ve BChE'ye yönelik farklı bitki EO'larının IC50 değerleri (μg/ mL )
        1 C. verum 453,7±2,9 184,7±1,1
        2 M. komün 405,1±3,9 431,5±34,8****
        3 R. graveolens > 500 333,1±23,6***
        4 A. mezar > 500 335,7±7,9***
        5 M. kokular > 500 > 500
        6 C sativus > 500 > 500
        7 sinamaldehit > 100 c > 100 c
        8 Donepezil 0,020 ± 0,002 1,50 ± 0,27
        Ayrı bir pencerede aç
        a IC50 değerleri, üç bağımsız deneyin ortalama ± SD'si olarak sunuldu

        b Her bir EO'nun ortalama karşılaştırması, tek yönlü ANOVA testi ve ardından Tukey post-hoc çoklu karşılaştırmalar yoluyla C. verum'dan elde edilen değerle karşılaştırıldı (**** p  < 0,0001 ve *** p  < 0,001)

        c uM

        C. verum bark EO'nun nöroprotektivite çalışması
        En iyi BChE inhibe edici aktiviteye sahip olan C. verum kabuğu EO'nun nöro-koruyuculuğu, MTT tahlili ile Aβ 25-35 tarafından indüklenen PC12 hücre hasarı kullanılarak araştırıldı. Referans ilaç olarak kafeik asit ile karşılaştırıldığında hiçbir aktivite göstermedi.

        C. verum kabuğu EO'nun in vitro BACE1 inhibitörü
        C. verum kabuğu EO, BACE1 inhibe edici aktivitesi açısından değerlendirildi ve referans inhibitör olarak OM99-2 ile karşılaştırıldı. Sonuçlar Tabloda gösterilmiştir. 2.

        Tablo 2


        C. verum kabuğu EO'nun BACE1 inhibitör aktivitesi
        1 100 mg/mL konsantrasyonda EO %62,64 -
        2 500 mg/mL konsantrasyonda EO %41,79 -
        3 OM99-2 bir - 0,88 ± 0,66
        Ayrı bir pencerede aç
        bir Standart BACE1 inhibitörü

        C. verum kabuğu EO'nun kimyasal bileşimi
        C. verum kabuğu EO'nun GC-MS analizi , en güçlü BChE inhibitörü olarak incelenmiştir. Ana bileşikler, toplam esans yağının %93,26'sı Tablo'da belirtildiği gibi tanımlanmıştır. 3. Monoterpenler (%0,20), aldehitler (%69,49), monoterpenoidler (%0,20), seskiterpenler (%14,78), stirenler (%4,21), aromatik karboksilik asitler (%1,50), seskiterpenoidler (%2,54) dahil olmak üzere farklı bileşik sınıflarına aittiler. ), alkan hidrokarbonlar (%0,16) ve aromatik esterler (%0,18). Bunlar arasında, ( E )-sinnamaldehit en fazla bulunan bileşen (%68,23) ve δ-kadinen (%5,53), a-kopen (%4,25), sinnamaldehit dimetil asetal (%4,21) ve a-muurolen (%3,8) olarak tanımlandı. %) de önemliydi. Unutulmamalıdır ki diğer bileşenler %2'den az bulunmuştur. Dibütil ftalat varlığı, plastikleştirici kontaminasyonu ile ilişkili görünmektedir [ 36 ]. Tablo 3


        C. verum kabuğu EO'nun kimyasal bileşimi
        1 α-Pinene a 7.56 0.11 950 956
        2 kampen bir 7.85 0.09 973 981
        3 benzaldehit b 8.08 0.49 992 995
        4 3-fenilpropanal b 10.98 0,77 1157 1163
        5 izoborneol c 11.05 0.20 1162 1164
        6 ( E )-Sinnamaldehit b 12.41 68.23 1262 1268
        7 siklosatif d 13.15 0.45 1338 1344
        8 α-Kopene d 13.23 4.25 1343 1349
        9 Sinnamaldehit dimetil asetal e 13.39 4.21 1389 -
        10 İzosatif d 13.57 0,25 1407 -
        11 ( E )-Sinnamik asit f 13.74 1.50 1420 1428
        12 aromadendren d 13.82 0,26 1431 1439
        13 ( Z )-α-Bisabolene d 13.94 0.23 1469 1476
        14 α-Muurolen d 14.30 3.18 1471 1479
        15 δ-Cadinene d 14.49 5.53 1497 1503
        16 β-Oplopenon g 14.88 0,28 1580 1585
        17 δ-Kadinol g 15.21 0,64 1637 1644
        18 t-Kadinol g 15.46 1.26 1645 1649
        19 t-Muurolol g 15.57 0,36 1650 1650
        20 Cadalene d 15.72 0,63 1662 1665
        21 oktadekan h 16.42 0,16 1796 1800
        22 Dibütil ftalat i,6 16.99 0,18 1897 1906
        Toplam tanımlanan 93.26
        Ayrı bir pencerede aç
        1 Kimyasal bileşim, MS spektrumları ve Kovats tutma indekslerine dayalı olarak tanımlandı. Bileşikler, monoterpenler a , aldehitler b , monoterpenoidler c , seskiterpenler d , stirenler e , karboksilik asitler f , seskiterpenoidler g , alkan hidrokarbonlar h ve aromatik esterler i dahil olmak üzere farklı sınıflara aittir.

        2 Tutma süresi

        3 GC'ye (FID) göre algılandı

        4 Kovat tutma indeksi

        5 Hesaplanan tüm RI değerleri, PubChem ve NIST'de (Ulusal Standartlar ve Teknoloji Enstitüsü) alıntılanan aynı koşullarda literatürde bildirilen değerlerle karşılaştırıldı.

        6 Plastikleştiricilerin varlığı ile ilişkili olabilir

        C. verum kabuğu EO'daki ( E )-sinnamaldehit miktarı
        GC-MS analizine göre, ( E )-sinnamaldehit en bol bulunan bileşendi. Sonuçlar , 1000–50.000 mg/mL aralığında 0,996'dan büyük korelasyon katsayılarının (r2 ) olduğunu gösterdi. ( E )-cinnamaldehyde zirvesi 13.10 dakikada saptandı ve miktar, deney bölümünde açıklandığı gibi kalibrasyon eğrisi kullanılarak 1.1⋅10 5 µg/mL olarak hesaplandı.

        Moleküler yerleştirme çalışması
        C. verum kabuğu EO'da bildirilen en bol bileşikler (Tablo 3) δ-cadinene, t-cadinol, ( E )-cinnamaldehyde, cinnamaldehyde dimetil asetal, ( E )-cinnamic asit, a-copaene ve a-muurolene dahil olmak üzere, AChE, BChE'ye karşı araştırılacak bir in silico yaklaşımıyla kabul edildi, AD patogenezinde yer alan BACE1, MAO-A ve MAO-B (Tablolar 4,​,5,5,​,6,6,​,77ve​ve88). Tablo 4


        AChE'ye karşı C. verum kabuğu EO'da en bol bulunan bileşiklerin yerleştirme çalışması
        δ-Cadinene 60.89 Leu289 alkil
        trp286 alkil
        trp286 alkil
        trp286 Pi-Alkil
        Phe338 alkil
        Tyr341 Pi-Sigma
        Tyr341 alkil
        t-Kadinol 66.84 Tyr72 alkil
        Tyr72 Pi-Alkil
        Tyr124 Pi-Alkil
        Tyr341 H-Bağı
        Tyr341 alkil
        Tyr341 alkil
        Tyr341 Pi-Alkil
        trp286 Pi-Alkil
        trp286 alkil
        Phe338 alkil
        Phe338 alkil
        Val294 alkil
        ( E )-sinnamaldehit 46.97 Tyr72 H-Bağı
        Phe297 Pi-Pi Yığılmış
        trp286 Pi-Pi Yığılmış
        Tyr341 Pi-Pi Yığılmış
        Sinnamaldehit dimetil asetal 56.76 Phe297 Pi-Pi Yığılmış
        Phe338 H-Bağı
        Tyr341 Pi-Pi Yığılmış
        (E) -Sinnamik asit 52.02 trp86 Pi-Pi Yığılmış
        asp74 H-Bağı
        Tyr337 H-Bağı
        Tyr341 H-Bağı
        Tyr341 H-Bağı
        α-Kopaen 54.85 trp86 Pi-Alkil
        trp86 Pi-Alkil
        trp86 Pi-Alkil
        trp86 Pi-Alkil
        Tyr337 Pi-Alkil
        Tyr337 Pi-Alkil
        Tyr337 Pi-Alkil
        Phe338 Pi-Alkil
        Phe338 Pi-Alkil
        Tyr341 Pi-Alkil
        Tyr341 Pi-Alkil
        onun447 Pi-Alkil
        onun447 Pi-Alkil
        α-Muurolen 63.23 trp86 Pi-Sigma
        trp86 Pi-Alkil
        trp86 Pi-Alkil
        Tyr337 Pi-Sigma
        Tyr337 Pi-Alkil
        Tyr341 Pi-Alkil
        Tyr341 Pi-Alkil
        Phe338 Pi-Alkil
        onun447 Pi-Alkil
        onun447 Pi-Alkil
        Ayrı bir pencerede aç Tablo 5


        BChE'ye karşı C. verum kabuğu EO'da en bol bulunan bileşiklerin yerleştirme çalışması
        δ-Cadinene 49.89 trp82 Pi-Alkil
        trp82 Pi-Alkil
        trp82 Pi-Alkil
        trp82 Pi-Alkil
        Tyr128 Pi-Alkil
        onun438 Pi-Alkil
        t-Kadinol 53.46 trp82 Pi-Alkil
        trp82 Pi-Sigma
        ala328 alkil
        onun438 alkil
        ( E )-sinnamaldehit 44.42 trp82 Pi-Pi Yığılmış
        onun438 Pi-Pi Yığılmış
        Sinnamaldehit dimetil asetal 48.17 trp82 Pi-Pi Yığılmış
        trp332 H-Bağı
        (E) -Sinnamik asit 54.52 asp70 H-Bağı
        trp82

        trp332

        onun438
        Pi-Pi Yığılmış

        H-Bağı

        Pi-Pi Yığılmış
        α-Kopaen 49.48 trp82 Pi-Alkil
        trp82 Pi-Alkil
        trp82 Pi-Alkil
        trp82 alkil
        trp82 alkil
        trp430 Pi-Alkil
        ala328 Pi-Alkil
        ala328 alkil
        Phe329 alkil
        Tyr332 alkil
        α-Muurolen 48.53 trp82 Pi-Alkil
        trp82 alkil
        trp82 Pi-Sigma
        Tyr440 alkil
        ala328 alkil
        ala328 Pi-Alkil
        Phe329 alkil
        onun438 Pi-Alkil
        onun438 alkil
        Ayrı bir pencerede aç Tablo 6


        BACE1'e karşı C. verum kabuğu EO'da en bol bulunan bileşiklerin yerleştirme çalışması
        δ-Cadinene 47.55 Tyr71 Pi-Alkil
        Tyr71 Pi-Alkil
        Phe108 Pi-Alkil
        trp115 Pi-Alkil
        t-Kadinol 42.14 Tyr71 Pi-Alkil
        Tyr71 Pi-Alkil
        Gln73 H-Bağı
        ( E )-sinnamaldehit 38.09 Tyr71 H-Bağı
        Ile118 Pi-Alkil
        Sinnamaldehit dimetil asetal 43.77 trp71

        asp228
        Pi-Pi Yığılmış

        H-Bağı
        (E) -Sinnamik asit 46.22 Thr72 H-Bağı
        Tyr71 Pi-Pi Yığılmış
        Ile126 Pi-Alkil
        α-Kopaen 44.32 Leu30 alkil
        Tyr71 alkil
        Tyr71 alkil
        Tyr71 alkil
        Phe108 Pi-Alkil
        Phe108 Pi-Alkil
        Phe108 Pi-Alkil
        trp115 alkil
        α-Muurolen 42.45 trp71 Pi-Alkil
        trp71 alkil
        trp71 alkil
        trp71 alkil
        trp198 alkil
        Ile226 alkil
        Ayrı bir pencerede aç Tablo 7


        MAO-A'ya karşı C. verum kabuğu EO'da en bol bulunan bileşiklerin yerleştirme çalışması
        δ-Cadinene 47.31 Ile180 alkil
        Ile180 alkil
        Ile180 Pi-Alkil
        Phe208 alkil
        Phe208 alkil
        Cys323 alkil
        Cys323 Pi-Alkil
        Ile335 Pi-Alkil
        Ile335 alkil
        Leu337 Pi-Alkil
        Leu337 Pi-Alkil
        Leu337 alkil
        t-Kadinol 46.96 Tyr69 alkil
        Ile207 H-Bağı
        Ile335 alkil
        Ile335 Pi-Alkil
        Leu337 alkil
        Leu337 Pi-Alkil
        met350 alkil
        Tyr407 alkil
        Tyr407 alkil
        Tyr444 alkil
        Phe352 alkil
        Gln215 elverişsiz
        ( E )-sinnamaldehit 36.37 Tyr407 van der Waals
        Sinnamaldehit dimetil asetal 52.21 Tyr69 H-Bağı
        Phe208 Pi-Pi T Şeklinde
        Ile335 Pi-Sigma
        Leu337

        Tyr407

        Phe352
        pi-alkil

        H-Bağı

        H-Bağı
        (E) -Sinnamik asit 46.43 asn181 H-Bağı
        Tyr444 H-Bağı
        Tyr444 H-Bağı
        Leu337 Pi-Alkil
        Ile335 Pi-Alkil
        met350 Pi-Kükürt
        α-Kopaen 43.60 Tyr407 alkil
        Tyr407 alkil
        Tyr444 alkil
        Tyr69 alkil
        Phe352 alkil
        Phe352 alkil
        Leu337 alkil
        Ile335 alkil
        Ile335 Pi-Alkil
        Ile335 alkil
        Ile335 Pi-Alkil
        Ile180 alkil
        Ile180 Pi-Alkil
        Phe208 alkil
        α-Muurolen 45.46 Tyr407 alkil
        Ile180 alkil
        Ile180 Pi-Alkil
        Phe208 alkil
        Phe208 Pi-Alkil
        Ile325 alkil
        Ile335 alkil
        Ile335 Pi-Alkil
        Val210 alkil
        Phe352 Pi-Alkil
        Ile337 Pi-Alkil
        Ile337 alkil
        met350 elverişsiz
        met350 elverişsiz
        Ayrı bir pencerede aç Tablo 8


        MAO-B'ye karşı C. verum kabuğu EO'da en bol bulunan bileşiklerin yerleştirme çalışması
        δ-Cadinene 50.37 Leu164 alkil
        Leu164 alkil
        trp119 alkil
        Leu167 alkil
        Ile316 alkil
        Ile316 Pi-Alkil
        Phe168 alkil
        Phe168 alkil
        Cys172 Pi-Alkil
        Leu171 Pi-Alkil
        Leu171 alkil
        Tyr326 Pi-Alkil
        Tyr326 alkil
        Ile199 alkil
        Ile199 alkil
        Ile199 Pi-Alkil
        t-Kadinol 46.64 Leu88 alkil
        pro104 alkil
        pro104 alkil
        Phe103 alkil
        Phe103 Pi-Alkil
        Leu164 alkil
        Leu164 Pi-Alkil
        Ile199 Pi-Alkil
        Trp199 alkil
        Trp199 Pi-Alkil
        Ile316 Pi-Alkil
        Tyr326 Pi-Alkil
        ( E )-sinnamaldehit 46.25 Leu164 Pi-Alkil
        Ile199 H-Bağı
        Ile316 Pi-alkil'
        Tyr326 H-Bağı
        Sinnamaldehit dimetil asetal 52.57 Ieu171 Pi-Sigma
        Cys172 Pi-Kükürt
        Ile199 Pi-alkil'
        Tyr326 Pi-Pi T-şekilli
        (E) -Sinnamik asit 51.41 pro102 H-Bağı
        Leu164 Pi-Alkil
        Leu167 Pi-Alkil
        Phe168 Pi-Pi T-şekilli
        Ile199 Pi-Alkil
        Ile316 Pi-Alkil
        Tyr326 H-Bağı
        trp119 Pi-Alkil
        α-Kopaen 50.05 Phe168 Pi-Alkil
        Phe168 alkil
        Cys172 alkil
        Leu171 Pi-Alkil
        Leu171 alkil
        Leu171 alkil
        Leu167 alkil
        Leu167 alkil
        Leu164 Pi-Alkil
        Ile199 alkil
        Ile199 alkil
        Ile199 Pi-Alkil
        Ile316 alkil
        Ile316 alkil
        Ile316 Pi-Alkil
        Ile316 Pi-Alkil
        α-Muurolen 51.32 Leu167 alkil
        Leu164 alkil
        Phe168 alkil
        Leu171 alkil
        Leu171 Pi-Alkil
        Cys172 alkil
        Ile199 alkil
        Ile199 alkil
        Ile199 Pi-Alkil
        Ile199 Pi-Alkil
        Ile316 alkil
        Ile316 alkil
        Ile316 Pi-Alkil
        Tyr326 alkil
        Ayrı bir pencerede aç

        Tablolara göre 4ve​ve55AChE ve BChE'nin seçilen bileşikler tarafından inhibisyonu ile ilgili olan bu bileşenler, sırasıyla 66.84 ila 46.97 ve 54.52 ila 44.42 altın skor değerleri olan enzimlerle etkileşime etkili bir şekilde katıldı. Ayrıca BACE1'e karşı 47.55 ile 38.09 aralığında altın skor değerleri sergilediler (Tablo 6). Bu bileşik serisinde 8-kadinen ve ( E )-sinamik asit, sırasıyla 47.55 ve 46.22 altın skor değerleri ile en iyi afiniteyi kaydetti. MAO-A durumunda (Tablo 7), altın skor değerleri ise 52,21 ile 36,37 aralığında kaydedildi. Bu grupta sinnamaldehit dimetil asetal enzime en iyi afiniteyi gösterdi. Son olarak, C. verum kabuğu EO'da en çok bulunan bileşikler, MAO-B'ye karşı 52,57 ila 46,25 arasında altın skor değerleri göstermiştir (Tablo 8). Bu bağlamda sinnamaldehit dimetil asetal (altın skor = 52.57), (E) -sinamik asit (altın skor = 51.41) ve α-muurolene (altın skor = 51.32) bu serideki en güçlü bileşikler olarak bulundu.

        Git: Tartışma
        AD, çoklu terapötik yaklaşımlar gerektiren ilerleyici bir nörodejeneratif bozukluk hastalığıdır. Son yıllarda aromaterapi, AD hastalığından kaynaklanan bilişsel bozukluğu azaltmak için etkili bir araç olarak bulunmuştur [ 22-24 ] . Bu amaçla C. verum bark, M. communis'in yaprakları, R. graveolens'in toprak üstü kısımları , A. graveolens tohumları, M. fragrans'ın tohum çekirdeği ve C. sativus EO'larının çiçeklerinin aktivitesi üzerinde durulmuştur. ITM'de aromaterapi yoluyla hafızayı geliştirmeleri önerildiği için [ 19 ]. Anti-AD aktivitesinin olduğunu belirtmekte fayda var.Tarçın sp. nörodejeneratif bozukluklar için ilaç geliştirmek için tarçının gerekli olduğunu gösteren klinik veya preklinik çalışmalarda çeşitli mekanizmalar yoluyla kanıtlanmıştır [ 37 ].

        EO'lar, umut verici bir ChE inhibe edici aktivite göstermiştir ve a-pinen gibi çeşitli bileşikler, istenen aktiviteyi indüklemekten sorumludur [ 13 ]. Literatüre göre Cinnamomum zeylanicum yapraklarının metanol özü (Kalküta-Hindistan'daki yerel pazardan) , galantamin (IC 50 s = 22.34) ile karşılaştırıldığında sırasıyla 77.78 ve 88.62 µg/mL IC50 değerleri ile AChEI ve BChEI'ye karşı iyi aktivite göstermiştir. ve sırasıyla 25.35) [ 38 ]. Ayrıca, izole edilmiş yağ için karşılık gelen değerler IC50 olarak bildirilmiştir .s = sırasıyla 45,88 ve 87,39 µg/mL. Görünüşe göre metanolik ekstraktın uçucu yağdan daha güçlü olduğu bulundu. Tepe ve ark. C. zeylanicum barks EO'nun (Kilis-Türkiye yerel pazarından) AChE ve BChE inhibitör aktivitesini 20 mg/mL konsantrasyonda %99.68 ve %99.18 olarak kaydetti, inhibisyon yüzdesi %89.4 ve %74.83 olan galantamin ile karşılaştırıldığında sırasıyla [ 39 ]. Bu raporlardaki pozitif kontrollerin ve bizim çalışmamızın farklı olduğu göz önüne alındığında, EO potensinin karşılaştırılması için daha fazla tartışma sağlanamaz. EO kompozisyon yüzdesinin, bitki toplama sahasının coğrafi alanı ve iklim koşullarına bağlı olduğu açıktır. Bu çalışmada, C. verum'un iyi ve seçici BChEI aktivitesiBu enzimin AD'nin şiddetli/geç evrelerinde yüksek konsantrasyonda varlığı gösterildiğinden, EO geç evre AD'li hastaların tedavisinde önemli olacaktır [ 40 ].

        ( E )-sinnamaldehit, C. verum EO'nun en bol bulunan bileşeni olduğundan , anti-ChE aktivitesi açısından da değerlendirilmiştir (Tablo 1, Giriş 7), karşılık gelen inhibitör aktiviteden sorumlu olup olmadığı. Hem AChE hem de BChE'ye karşı hiçbir inhibitör aktivite göstermedi, sonuç olarak, C. verum EO'nun aktivitesi muhtemelen birkaç bileşiğin sinerjistik etkileriyle ilişkilidir.

        Tarçın, AD ve bunamaya karşı önemli bir koruma göstermiştir. Örneğin, C. verum kabuğunun hidroalkolik ekstraktının 200 mg/kg konsantrasyonda 21 gün boyunca uygulanması, deneysel sıçan modelinde skopolamin kaynaklı hafıza bozukluğunda, hafızanın edinimini ve tutulmasını önemli ölçüde bozduğunu göstermiştir [ 41 ]. Ayrıca, 10 mg/kg konsantrasyonundaki tarçınlı polifenol özü, erkek farelerde travmatik beyin hasarında enfarktüs ve ödem oluşumunu etkili bir şekilde azaltmıştır. Beyin travmasının dikkate değer rolü, AD gelişimi için önemli bir risk faktörü olarak tanımlanmıştır [ 42 ]. Bununla birlikte, tarçın yağının nöroprotektivitesi hakkında bir rapor yoktur. Bu çalışmada, C. verumbark EO, PC12 hücrelerinde β-amiloid (Aβ) kaynaklı nörotoksisiteye karşı hiçbir nöroprotektif aktivite göstermedi. Parkinson hastalığının bir MPTP (1-metil-4-fenil-1,2,3,6-tetrahidropiridin) fare modelinde [ 43 ] ve PC12 hücrelerinde glutamatın indüklediği oksidatif streste [ 44 ] ( E )-sinnamaldehidin rolü ] literatürde belgelenmiştir, görünüşe göre Ap 25−35 tarafından indüklenen PC12 hücre hasarının korunmasında hiçbir rol oynamamıştır .

        C. verum'un BACE1 inhibe edici aktivitesi literatürde araştırılmamıştır ve burada OM99-2 ile karşılaştırıldığında 500 ve 100 mg/mL'de sırasıyla %62,64 ve %41,79'luk inhibisyon yüzdesi gösterdiğini bulduk (IC 50  = 0,88 ) ± 0,66 uM). Ancak, Kang ve arkadaşları tarafından bir rapor var. [ 45 ], 100 ug/mL konsantrasyonda tarçın kabuğunun metanol ekstraktının, enzime bağlı immünosorbent deneyi ile belirlendiği üzere, amiloid öncü proteini (APP) kararlı bir şekilde eksprese eden Çin hamsteri yumurtalık (CHO) hücrelerinde Aβ40 üretimini azalttığını göstermiştir. β-Amiloid (Aβ) yoluyla üretilirβ-sekretaz ve γ-sekretaz ile APP'den amiloidojenik yol. Ekstrakttan izole edilen altı fenilpropanoid arasında kriptamigin A, 4 µg/mL konsantrasyonda Aβ40 üretimini %60 azalttı.

        Son olarak, EO bileşenlerinin ve AD'de yer alan farklı hedeflerin etkileşimini daha iyi anlamak için moleküler yerleştirme çalışması yapıldı. Bu bağlamda, δ-cadinene, t-cadinol, ( E )-sinnamaldehit, sinnamaldehit dimetil asetal, ( E )-sinnamik asit, α-kopen ve α-muurolenin AChE, BChE, BACE1, AD'nin oluşumundan ve ilerlemesinden sorumlu olan MAO-A ve MAO-B çalışıldı. Altın puan değerlerine odaklanma (Tablolar 4,​,5,5,​,6,6,​,77ve​ve8),8), bu bileşikler ve AChE ile BChE arasında arzu edilen etkileşimler oluşturulmuştur. Ayrıca δ-kadinen ve ( E )-sinamik asit, çalışmamızda in vitro sonuçları destekleyen BACE1'e en iyi afiniteyi göstermiştir. Sinnamaldehit dimetil asetalin MAO-A ve MAO-B'nin güçlü bir inhibitörü olduğu bulundu, ancak ( E )-sinnamik asit ve a-muurolen, MAO-B'yi etkili bir şekilde inhibe edebilir. Tarçın yağının güçlü bir MAO-A ve MAO-B inhibitörü olabileceğini gösteriyordu. C. zeylanicum EO'nun, rasajilin (sırasıyla %97,42 ve %97,8) ile karşılaştırıldığında 2,0 mg/mL'lik bir konsantrasyonda sırasıyla %96,44 ve %96,32'lik inhibisyon yüzdesiyle MAO-A ve MAO-B inhibe edici aktiviteye sahip olduğu bildirilmiştir. ) [ 39 ].

        Git: Çözüm
        Sonuç olarak, C. verum esansiyel yağı, iyi ChE ve BACE1 inhibitör aktivitesi elde edildiğinden AD semptomlarının yönetiminde düşünülebilir.  AChEI aktivitesine (IC 50  = 453,7 µg/mL) kıyasla daha iyi BChEI (IC 50 = 184,7 µg/mL) aktivitesi rapor edildiğinden, ileri evre AD'li hastaların aromaterapisi için yararlı olabilir .

        Git: teşekkürler
        Yazarlar, Tahran Medica Sciences Üniversitesi'nin desteğine teşekkür eder.

        Git: Kısaltmalar
        AChE asetilkolinesteraz
        AD Alzheimer hastalığı
        Aβ β-Amiloid
        BACE1 beta-Sekretaz 1
        BChE Butirilkolinesteraz
        ChE kolinesteraz
        EO Esans
        GC-MS Gaz kromatografisi-kütle spektroskopisi
        ITM İran Geleneksel Tıbbı
        MAO-A monoamin oksidaz A
        MAO-B monoamin oksidaz B
        Git: Yazar katkıları


        MS projelendirmeyi tasarladı ve taslağı hazırladı. AI yerleştirme çalışması gerçekleştirdi. YV-M, EO'ların alınmasına ve yazının hazırlanmasına katkıda bulundu. AA, CG analizi gerçekleştirdi. NE, BACE1 inhibitör testine katkıda bulunmuştur. OF, nöroprotektivite testine katkıda bulunmuştur. ME, istenen bitkileri önermek için İran Geleneksel Tıbbı (ITM) kaynaklarını araştırdı. TA, projenin tüm aşamalarını denetledi. Yazar(lar) son makaleyi okudu ve onayladı.

        Git: Finansman


        Bu araştırma, Tahran Medica Sciences Üniversitesi'nden 96-02-96-35685 hibe numarası ile bir hibe ile desteklenmiştir.

        Git: Veri ve materyallerin mevcudiyeti


        İlgili tüm veriler makaleye dahil edilmiştir ve makul talep üzerine ilgili yazardan temin edilebilir.

        Git: Beyannameler

        Etik onay ve katılım onayı
        El yazması, hayvan deneklerle yapılan çalışmaları içermemektedir. Tüm prosedürler yönergelere uygun olarak gerçekleştirildi: - https://www.biomedcentral.com/getpub...volving+plants .

        yayın izni
        Uygulanamaz.

        Rekabet eden çıkarlar
        Yazarlar herhangi bir çıkar çatışması veya çatışan mali çıkar beyan etmemektedir.

        Git: Dipnotlar


        Yayıncının Notu

        Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


        Git: Referanslar

        1. Chen XQ, Mobley WC. Bazal ön beyin kolinerjik nöronlarda Alzheimer hastalığının patogenezini araştırmak: Alternatif hipotezlerden elde edilen içgörüleri birleştirmek. Ön Nörobilim. 2019; 13 :446. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        2. Takahashi RH, Nagao T, Gouras GK. Alzheimer hastalığında plak oluşumu ve β-amiloidin intranöronal birikimi. Pathol Uluslararası 2017; 67 (4):185–93. [ PubMed ] [ Google Akademik ]
        3. Naseri NN, Wang H, Guo J, Sharma Mm, Luo W. Alzheimer hastalığında tau'nun karmaşıklığı. Neurosci Lett. 2019; 705 :183–94. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        4. Bhat AH, Dar KB, Anees S, Zargar MA, Masood A, Sofi MA, Ganie SA. Oksidatif stres, mitokondriyal disfonksiyon ve nörodejeneratif hastalıklar; mekanik bir anlayış. Biyomedikal Eczacı. 2015; 74 :101–10. [ PubMed ] [ Google Akademik ]
        5. Cummings JL, Tong G, Ballard C. Alzheimer hastalığı için tedavi kombinasyonları: Mevcut ve gelecekteki farmakoterapi seçenekleri. J Alzheimer Dis. 2019; 67 (3):779–94. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        6. Wang N, Qiu P, Cui W, Yan X, Zhang B, He S. Çok hedefli anti-Alzheimer hastalığı bileşiklerindeki son gelişmeler (2013'ten Günümüze) Curr Med Chem. 2019; 26 (30):5684–710. [ PubMed ] [ Google Akademik ]
        7. İbrahim MM, Gabr MT. Alzheimer hastalığı için çok hedefli terapötik stratejiler. Nöral Regen Res. 2019; 14 (3):437–40. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        8. Efferth T, Koch E. Fitokimyasallar arasındaki karmaşık etkileşimler. Fitoterapinin çok hedefli terapötik konsepti. Curr İlaç Hedefleri. 2011; 12 (1):122–32. [ PubMed ] [ Google Akademik ]
        9. Andrade S, Ramalho MJ, Loureiro JA, Pereira MdC. Alzheimer hastalığı tedavisi için doğal bileşikler: preklinik ve klinik çalışmaların sistematik bir incelemesi. Int J Mol Sci. 2019; 20 (9):2313. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        10. Maggio A, Rosselli S, Bruno M. Alzheimer hastalığı tedavisinde potansiyel ilaçlar olarak uçucu yağlar ve saf uçucu bileşikler: Literatürün güncellenmiş bir incelemesi. Curr Ecz. Des. 2016; 22 (26):4011–27. [ PubMed ] [ Google Akademik ]
        11. Benny A, Thomas J. Alzheimer hastalığı için tedavi stratejisi olarak uçucu yağlar: Mevcut ve gelecekteki perspektifler. Bitki Med. 2019; 85 (3):239–48. [ PubMed ] [ Google Akademik ]
        12. Angane M, Swift S, Huang K, Butts CA, Quek SY. Uçucu yağlar ve ana bileşenleri: Antimikrobiyal aktiviteler, etki mekanizması ve bunların gıda endüstrisindeki potansiyel uygulamaları hakkında güncellenmiş bir inceleme. yiyecekler. 2022; 11 (3):464. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        13. Burčul F, Blažević I, Radan M, Politeo O. Kolinesteraz inhibitörleri olarak terpenler, fenilpropanoidler, kükürt ve diğer uçucu yağ bileşenleri. Cur Med Chem. 2020; 27 (26):4297–343. [ PubMed ] [ Google Akademik ]
        14. Rashed AA, Rahman AZA, Rathi DNG. Yaşa bağlı nörodejeneratif hastalıklar için potansiyel bir nöroprotektif ilaç olarak uçucu yağlar: Bir inceleme. moleküller. 2021; 26 (4):1107. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        15. Ayaz M, Sadiq A, Junaid M, Ullah F, Subhan F, Ahmed J. Aromatik ve şifalı bitkilerden elde edilen uçucu yağların nöroprotektif ve anti-aging potansiyelleri. Ön Yaşlanma Nörobilim. 2017; 9 :168. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        16. Videira R, Castanheira P, Grãos M, Salgueiro L, Faro C, Cavaleiro C. Alzheimer hastalığında β-sekretaz olan BACE-1'in hücre geçirgen inhibitörü olarak Lavandula luisieri esansiyel yağından elde edilen bir nekrodan monoterpenoid. Lezzet Kokusu J. 2013; 28 (6):380–8. [ Google Akademik ]
        17. Soheili M, Khalaji F, Mirhashemi M, Salami M. Lavandula angustifolia esansiyel yağının amiloid beta polimerizasyonu üzerindeki etkisi: Bir in vitro çalışma. İran J Chem Chem Müh. 2018; 37 (6):201–7. [ Google Akademik ]
        18. Moss M, Cook J, Wesnes K, Duckett P. Biberiye ve lavanta esansiyel yağlarının aromaları, sağlıklı yetişkinlerde biliş ve ruh halini farklı şekilde etkiler. Int J Neurosci. 2003; 113 (1):15–38. [ PubMed ] [ Google Akademik ]
        19. Han AH. En Büyük İksir (Exir Azam). Tahran. İslami ve Tamamlayıcı Tıp Araştırma Enstitüsü. 2009;267 – 80.
        20. Brasure M, Desai P, Davila H, Nelson VA, Calvert C, Jutkowitz E, Butler M, Fink HA, Ratner E, Hemmy LS, McCarten JR. Bilişsel düşüşü ve Alzheimer tipi demansı önlemede fiziksel aktivite müdahaleleri: sistematik bir derleme. Anne Intern Med. 2018; 168 (1):30–8. [ PubMed ] [ Google Akademik ]
        21. Kouzuki M, Kitao S, Kaju T, Urakami K. Banyo tuzu olarak aroma yağının bilişsel işlev üzerindeki etkisinin değerlendirilmesi. Psikogeriatri. 2020; 20 (2):163–71. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        22. Flanagan N. Alzheimer hastalarında aromaterapinin klinik kullanımı. Alternatif Tamamlayıcı Ther. 1995; 1 :377–80. [ Google Akademik ]
        23. Kim EK, Park H, Lee CH, Park E. Demanslı hastalarda aromaterapinin ajitasyon üzerindeki etkileri: Sistematik bir literatür taraması ve meta-analiz. J Korean Acad Toplum Sağlığı Hemşireleri. 2019; 30 (2):183–94. [ Google Akademik ]
        24. Agatonovic-Kustrin S, Chan CKY, Gegechkori V, Morton DW. Demans hastaları için aromaterapide kullanılan uçucu yağlardan elde edilen ana bileşenlerin cilt ve beyin penetrasyonu için modeller. J Biomol Yapı Dyn. 2020; 38 (8):2402–11. [ PubMed ] [ Google Akademik ]
        25. Saeedi M, Babaie K, Karimpour-Razkenari E, Vazirian M, Akbarzadeh T, Khanavi M, Hajimahmoodi M, Ardekani MRS. İran geleneksel tıbbında kullanılan bazı bitkilerin in vitro kolinesteraz inhibitör aktivitesi. Nat Ürün Arş. 2017; 31 (22):2690–4. [ PubMed ] [ Google Akademik ]
        26. Rahmani-Nezhad S, Dianat S, Mahdizadeh V, Fooladi Z, Hariri R, Najafi Z, Firuzi O, Vahedi-Mazdabadi Y, Farjadmand F, Akbarzadeh T, Saeedi M. Agaricus'un İran ve Fransız suşlarından elde edilen polisakkarit ekstraktlarının araştırılması alzheimer hastalığına karışan enzimlere karşı subrufescens . B Latinoam Caribe PL. 2019; 18 (6):544–54. [ Google Akademik ]
        27. Kahkeshani N, Hadjiakhoondi A, Navidpour L, Akbarzadeh T, Safavi M, Karimpour-Razkenari E, Khanavi M. Chemodiversity of Nepeta menthoides Boiss. & Bohse. İran'dan uçucu yağ ve 1,8-sineol kemotipinin antimikrobiyal, asetilkolinesteraz inhibe edici ve sitotoksik özellikleri. Nat Ürün Arş. 2018; 32 (22):2745–48. [ PubMed ] [ Google Akademik ]
        28. Vahedi-Mazdabadi Y, Karimpour-Razkenari E, Akbarzadeh T, Lotfian H, Toushih M, Roshanravan N, Saeedi M, Ostadrahimi A. Tatlı ve acı kayısı çekirdeklerinin ( Prunus armeniaca L.) in vitro antikolinesteraz ve nöroprotektif aktiviteleri İran J Pharm Res. 2020; 19 (4):216–24. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        29. Saeedi M, Vahedi-Mazdabadi Y, Rastegari A, Soleimani M, Eftekhari M, Akbarzadeh T. Alzheimer hastalığı ile ilgili biyolojik aktiviteler için Asarum europaeum L. rizomun değerlendirilmesi. Res J Eczacılık. 2020; 7 (3):25–33. [ Google Akademik ]
        30. Omidpanah S, Vahedi-Mazdabadi Y, Manayi A, Rastegari A, Hariri R, Mortazavi-Ardestani E, Eftekhari M, Khanavi M, Akbarzadeh T, Saeedi M. Myristica fragrans Houtt'un etil asetat fraksiyonunun fitokimyasal araştırması ve antikolinesteraz aktivitesi. tohumlar. Nat Ürün Arş. 2022; 36 (2):610–16. [ PubMed ] [ Google Akademik ]
        31. Bozorgi M, Najafi Z, Omidpanah S, Sadri A, Narimani Z, Moghadam FH, Edraki N, Firuzi O, Akbarzadeh T, Saeedi M. Areka fındığının sulu ekstraktının ( Areca catechu L.) anti-Alzheimer aktivitesinin araştırılması : In vitro ve in vivo çalışmalar. B Latinoam Caribe PL. 2021; 20 (4):406–15. [ Google Akademik ]
        32. Manayi A, Rastegari A, Heydarian B, Vahedi-Mazdabadi Y, Khanavi M, Akbarzadeh T, Saeedi M. Doronicum pardalianches L. köklerinin Alzheimer hastalığına karşı fitokimyasal araştırması ve biyolojik aktivitesi. Nat Ürün Arş. 10.1080/14786419.2021.1999944. [ PubMed ]
        33. Vafadarnejad F, Mahdavi M, Karimpour-Razkenari E, Edraki N, Sameem B, Khanavi M, Saeedi M, Akbarzadeh T. Yeni kumarin-piridinyum hibritlerinin tasarımı ve sentezi: In vitro kolinesteraz inhibitör aktivite. Bioorg Kimya 2018; 77 :311–9. [ PubMed ] [ Google Akademik ]
        34. Iraji A, Firuzi O, Khoshneviszadeh M, Tavakkoli M, Mahdavi M, Nadri H, Edraki N, Miri R. Alzheimer hastalığını hedefleyen BACE1 inhibitörü, nöroprotektif ve metal şelatlayıcı özelliklere sahip farklı aminometilen triazol içeren çok işlevli iminokromen-2 H -karboksamid türevleri . Eur J Med Chem. 2017; 141 :690–702. [ PubMed ] [ Google Akademik ]
        35. Rastegari A, Nadri H, Mahdavi M, Moradi A, Mirfazli SS, Edraki N, Moghadam FH, Larijani B, Akbarzadeh T, Saeedi M. 1,2,3-triazole-romanının tasarımı, sentezi ve anti-Alzheimer aktivitesi kromenon karboksamid türevleri. Bioorg Kimya 2019; 83 :391–401. [ PubMed ] [ Google Akademik ]
        36. Omidpanah S, Saeidnia S, Saeedi M, Hadjiakhondi A, Manayi A. Bazı bitki ve bitkisel ürünlerin ftalat kontaminasyonu. B Latinoam Caribe PL. 2018; 17 (1):61–7. [ Google Akademik ]
        37. Sharifi-Rad J, Dey A, Koirala N, Shaheen S, El Omari N, Salehi B, Goloshvili T, Cirone Silva NC, Bouyahya A, Vitalini S, Varoni EM, Martorell M, Abdolshahi A, Docea AO, Iriti M , Calina D, Les F, López V, Caruntu C. Cinnamomum Türleri: Sağlık yararları için fitokimya bilgisi, farmakolojik özellikler ve toksikolojik güvenlik arasında köprü kurmak. Ön Eczacılık. 2021;12:600139. [ Ücretsiz PMC makalesi ] [ PubMed ]
        38. Dalai MK, Bhadra S, Chaudhary SK, Chanda J, Bandyopadhyay A, Mukherjee PK. Cinnamomum zeylanicum L. yaprak ekstraktının antikolinesteraz aktivitesi . 2014; 4 (2):11.1-6. [ Google Akademik ]
        39. Tepe AS, Mehmet Özaslan M. Cinnamomum zeylanicum esansiyel yağının anti-alzheimer, anti-diyabetik, cilt beyazlatıcı ve antioksidan aktiviteleri . End. Mahsul Üretimi 2020; 145 :112069. [ Google Akademik ]
        40. Wang H, Zhang H. Alzheimer hastalığına karşı antikolinesteraz terapötik stratejilerinin yeniden değerlendirilmesi. ACS Chem Neurosci. 2019; 10 (2):852–62. [ PubMed ] [ Google Akademik ]
        41. Jain S, Sangma T, Shukla SK, Mediratta PK. Cinnamomum zeylanicum ekstraktının sıçanlarda skopolamin kaynaklı bilişsel bozukluk ve oksidatif stres üzerindeki etkisi . Nutr Neurosci. 2015; 18 (5):210–16. [ PubMed ] [ Google Akademik ]
        42. Yuluğ B, Kılıç E, Altunay S, Ersavaş C, Orhan C, Dalay A, Tuzcu M, Şahin N, Juturu V, Şahin K. Tarçın polifenol ekstresi erkek farelerde travmatik beyin hasarında nöroprotektif aktivite gösterir. CNS Neurol Disord İlaç Hedefleri. 2018; 17 (6):439–47. [ PubMed ] [ Google Akademik ]
        43. Bae WY, Choi JS, Jeong JW. Parkinson hastalığının bir MPTP fare modelinde sinamik aldehitin nöroprotektif etkileri. Int J Mol Sci. 2018; 199 (2):551. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        44. Sv C, Yuan X, Zeng HW, Liu RH, Zhang WD. Sinnamaldehitin PC12 hücrelerinde glutamatın neden olduğu oksidatif strese ve apoptoza karşı koruyucu etkisi. Eur J Pharmacol. 2017; 815 :487–94. [ PubMed ] [ Google Akademik ]
        45. Kang YJ, Seo DG, Park SY. Tarçın kabuğundan elde edilen fenilpropanoidler, kararlı bir şekilde amiloid öncü proteini eksprese eden Çin hamsteri yumurtalık hücrelerinde β-sekretazın inhibisyonu yoluyla β-amiloid üretimini azalttı. Nutr Arş. 2016; 36 (11):1277–84. [ PubMed ] [ Google Akademik ]
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5
          Üç uçucu yağ karışımının antibakteriyel, antifungal ve antiviral etkileri

          Amandine Brochot 1, Angele Guilbot 1, Laïla Haddioui 2, Christine Roques 2 3
          üyelikler genişletmekÜcretsiz PMC makalesi Soyut

          Özellikle geleneksel antimikrobiyal ajanlara dirençli olanlar için yaygın patojenlere karşı etkili yeni ajanlara ihtiyaç duyulmaktadır. Uçucu yağlar (EO'lar) antimikrobiyal aktiviteleri ile bilinir. Et suyu mikrodilüsyon yöntemini kullanarak, (1) iki benzersiz Cinnamomum zeylanicum, Daucus carota, Eucalyptus globulus ve Rosmarinus officinalis EO karışımının (AB1 ve AB2; iki farklı tedarikçiden tarçın EO'ları) on dört Gram-pozitif'e karşı aktif olduğunu gösterdik ve - bazı antibiyotiğe dirençli suşlar da dahil olmak üzere test edilen negatif bakteri suşları. Minimal inhibitör konsantrasyonlar (MİK'ler), <%0,01 ila %6,00 v/v arasında minimum bakterisidal konsantrasyonlarla %0,01 ila %3 v/v aralığındaydı; (2) Cinnamomum zeylanicum, Daucus carota, Syzygium aromaticum, Origanum vulgare EO karışımı, test edilen altı Candida suşuna antifungal olmuştur, %0,01 ila %0,05 v/v arasında değişen MIC'ler ve %0,02 ila %0,05 v/v arasında minimum fungisidal konsantrasyonlar. Karışım AB1 ayrıca H1N1 ve HSV1 virüslerine karşı da etkili olmuştur. H1N1'e ve özellikle S. aureus ve S. pneumoniae'ye karşı bu ikili aktivite ile AB1, influenza ve postinfluenza bakteriyel pnömoni enfeksiyonlarını tedavi etmek için ilginç olabilir. Bu karışımlar, antimikrobiyal ilaçlara dirençli mikroorganizmaların neden olduğu enfeksiyonlar da dahil olmak üzere yaygın enfeksiyonlarla mücadele etmek için klinik uygulamada çok yararlı olabilir.

          Anahtar Kelimeler: E. coli; mantarlar; antimikrobiyaller; enfeksiyon; virüsler.

          © 2017 Yazarlar. MicrobiologyOpen, John Wiley & Sons Ltd. tarafından yayınlandı.
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6
            Cinnamomum verum ve Pelargonium graveolens esansiyel yağları ile flukonazol kombinasyonunun patojenik Candida suşlarına karşı antifungal mekanizması

            Rym Essid 1, Majdi Hamamı 2, dora garbi 1, Ines Karkouch 1, Thoraya Ben Hamouda 1, Salem Elkahoui 1, Ferid Limam 1, Olfa Tabbene 3
            üyelikler genişletmekSoyut

            Bu çalışma, on esansiyel yağın (EO) anti-Candida aktivitesini araştırmayı ve geleneksel ilaçlarla potansiyel sinerjilerini değerlendirmeyi amaçladı. Salgılanan aspartik proteaz (SAP) aktivitesi ve etki mekanizması üzerindeki etki de araştırıldı. Uçucu yağların antifungal özellikleri, standart mikro-et suyu seyreltme deneyi kullanılarak araştırıldı. Sadece Cinnamomum verum, Thymus capitatus, Syzygium aromaticum ve Pelargonium graveolens, çeşitli patojenik Candida suşlarına karşı geniş bir aktivite spektrumu sergiledi. Aktif uçucu yağların kimyasal bileşimi, gaz kromatografisi-kütle spektrometrisi (GC-MS) ile yapıldı. FIC değeri 0,37 olan C. verum/flukonazol ve P. graveolens/flukonazol kombinasyonları ile sinerjistik etki gözlendi. Etki mekanizmasının araştırılması, C. verum EO, ergosterol miktarını %83'e düşürdü. C. verum/flukonazol kombinasyonu için tam bir inhibisyon gözlendi. Bununla birlikte, P. graveolens EO, mantar hücre duvarının geçirgenlik bariyerini bozabilir. Osmoprotektanlarla (sorbitol ve PEG6000) P. graveolens EO ve flukonazol kombinasyonunun MİK değerlerinde artış gözlendi. Ayrıca, flukonazol ile kombinasyon C. albicans hücrelerinde ergosterol biyosentezini etkileyebilir ve yağ asidi homeostazını bozabilir, çünkü ergosterol ve oleik asit miktarı sırasıyla %52.33 ve %72'ye düşürülmüştür. P. graveolens ve C. verum EO'larının flukonazol ile kombinasyonu sırasıyla %78.31 ve %64.72 SAP aktivitesini inhibe etti. bilgimize göre, bu, uçucu yağların flukonazol ile sinerji içindeki SAP aktivitesinin etki mekanizmasının ve inhibe edici etkisinin altında yatan ilk rapordur. Doğal olarak oluşan fitokimyasallar C. verum ve P. graveolens, C. albicans enfeksiyonlarının flukonazol bazlı tedavisinin etkinliğini artırmak için etkili aday olabilir.

            Anahtar Sözcükler: Candida karşıtı aktivite; Aspartik proteaz; Esans; GC-MS; Hareket mekanizması; Sinerji.

            Yorum yap


            • #7
              Cinnamomum zeylanicum kabuğu ve yaprak esansiyel yağlarının Candida albicans ve Candida auris'e karşı in vitro antifungal aktivitesi

              Hoang NH Tran , 1 Lee Graham , 2 ve Emmanuel C. Adukwu 2
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              1 Yaşam Bilimleri Fakültesi, Fizyoloji, Farmakoloji ve Nörobilim Okulu, Bristol Üniversitesi, Bristol, BS8 1TH UK
              2 Biyolojik Bilimler Araştırma Merkezi, West of England Üniversitesi, Coldharbour Lane, Bristol, BS16 1QY UK
              Hoang NH Tran, E-posta: moc.liamg@hhnt.nartgnaoh .
              Katılımcı Bilgileri .
              Sorumlu yazar. İlişkili Veriler

              Veri Kullanılabilirliği Bildirimi
              Git: Soyut

              Candida enfeksiyonları, hasta morbidite ve mortalitesinin önemli bir kaynağıdır. Candida albicans , Candida enfeksiyonlarına neden olan en yaygın patojendir . Candida auris , insanlarda çok ilaca dirençli kandidiyazis ve kandidemi ile ilişkili yeni tanımlanmış bir patojendir. Çeşitli esansiyel yağların ve bitki bileşiklerinin antifungal etkileri insan patojenik mantarlara karşı kanıtlanmıştır. Bu çalışmada tarçın yaprağı ve ağaç kabuğu esansiyel yağlarının (CEO'lar) hem C. albicans hem de C. auris'e karşı etkisi belirlendi . EO'ların seçilen suşlara karşı antifungal aktivitesini belirlemek için disk difüzyon (direkt ve buhar) ve sıvı mikrodilüsyon yöntemi kullanıldı (C. albicans ATCC 10231, C. albicans ATCC 2091 ve C. auris NCPF 8971), CEO'ların etki şekli ve hemolizin aktivitesi ise elektron mikroskobu ve ışık mikroskobu kullanılarak belirlendi. Doğrudan ve buhar difüzyon deneyleri, yaprak CEO'ya kıyasla bark CEO'nun daha fazla inhibe edici aktivitesi gösterdi. Bark CEO'sunun test edilen tüm suşlar için minimum inhibitör konsantrasyonları (MIC'ler) ve minimum fungisidal konsantrasyonları (MFC'ler) %0,03'ün ( v / v ) altındaydı ve bu, yaprak CEO'nun MIC'lerinden (%0,06-0,13, v / v ) daha düşüktü. ) gerinime ve %0,25'teki MFC'lere bağlıdır ( v / v). Morfolojik girişim deneylerinde, hücre zarında hasar gözlemlendi ve her iki CEO da hif oluşumunu engelledi. Hemolizin üretim tahlili, CEO'ların test edilen C. albicans ve C. auris suşlarında hemolitik aktiviteyi azaltabileceğini gösterdi. Düşük konsantrasyonlarda, CEO'lar in vitro olarak C. albicans ve C. auris'e karşı güçlü antifungal ve antihemolitik aktivitelere sahiptir .

              Anahtar noktaları

              • Cinnamomum zeylanicum Blume kabuğu ve yaprağından (CBEO ve CLEO) elde edilen esansiyel yağlar, çok düşük konsantrasyonlarda mantar öldürücü özellikler göstermiştir.

              • CBEO'nun antifungal aktivitesi, yakın zamanda yayınlanan diğer literatürle uyumlu olarak CLEO'nunkinden daha yüksekti.

              • CBEO ve CLEO'nun etki şekli, C. albicans ve C. auris'in zarına zarar vermekti.

              • Hem CBEO hem de CLEO, C. albicans ve C. auris'te hif oluşumunu engelledi ve hemolizin üretimini azalttı.


              Anahtar Kelimeler: Candida enfeksiyonları, Antifungal, Antihemolitik, Uçucu yağ, Tarçın
              Git: Giriş

              Mantar enfeksiyonları, doğal dünyanın yaygın hastalıklarıdır. İnsanlarda, mantar enfeksiyonları, bağışıklık sistemi vücudun bir bölgesini istila eden önemli miktarda mantar veya maya ile baş edemediğinde ortaya çıkar. Birkaç mantar enfeksiyonu sınıfı vardır ve bunlardan Candida enfeksiyonları hasta morbidite ve mortalitesinin önemli bir nedeni olarak kabul edilir (Sardi ve ark. 2013 ). Candida enfeksiyonlarına komensal mantarlar Candida spp neden olur . , özellikle herhangi bir zamanda sağlıklı yetişkinlerin %30 ila 50'sinin derisinde, mukozasında ve gastrointestinal sisteminde bulunan ve herkes yaşamının bir noktasında kolonize olan Candida albicans (Brown ve Netea2007 ). Candida auris , maya olarak büyüyen, yeni tanımlanmış fırsatçı bir patojendir. C. auris'in birinci basamak antifungal, flukonazol dahil olmak üzere çeşitli mantar önleyici ilaç sınıflarına dirençli olduğu bilinmektedir ve diğer azollere, amfoterisin B'ye ve ekinokandinlere karşı değişken duyarlılık sergiler (Chowdhary ve ark. 2016 ). Ek olarak, C. auris , kişiden kişiye bulaşma potansiyeline sahiptir, klinisyenleri ve enfeksiyon kontrol ekiplerini zorlamaktadır (Ben-Ami ve ark. 2017 ).

              Uçucu yağlar (EO'lar), uçucu ve düşük moleküler ağırlıklı maddelerin bitki kaynaklı karmaşık sıvı karışımları olarak kabul edilir (Amorati ve diğerleri 2013 ; Raut ve Karuppayil 2014 ). Son zamanlarda, geleneksel tıptan çıkarılan doğal ürünler, yenilikçi modern ilaçların geliştirilmesine katkıda bulunmuştur (Yunes ve ark. 2005 ; Almeida ve ark. 2001 ). Çok sayıda EO'da mayalar dahil olmak üzere çeşitli bitki ve insan patojenik mantarlarına karşı antifungal aktivite keşfedilmiştir (Raut ve Karuppayil 2014 ; Chen ve ark. 2013 ; Bajpai ve ark. 2009 ; Li ve ark. 2014 ). Cinnamomum zeylanicum Blume ( cinnamomum zeylanicum Blume)Yaygın olarak Sri Lanka tarçını olarak bilinen Cinnamon verum J. Presl) Hindistan, Çin, Sri Lanka ve Avustralya'da yaygın olarak yetiştirilmektedir (Prasad ve ark. 2009 ). Yaprağı ve kabuğundan yapılan EO'ların yararlı antiseptik, bağışıklık uyarıcı, detoksifiye edici, analjezik ve antidepresan etkilere sahip olduğu tarif edilmiştir (Thosar ve diğerleri 2013 ; Gautam ve diğerleri 2014 ; Vaseeharan ve Thaya 2014 ; Tworkoski 2002 ; Topa ve diğerleri 2018 ) ).

              Hindistan'da Dalchini ( C. zeylanicum Blume kabuğu) genellikle suya batırılır ve diş çürüğü patojenlerini tedavi etmek için gargara solüsyonu olarak kullanılır. Aneja ve ark. ( 2009 ), Dalchini ekstraktının Saccharomyces cerevisiae ve C. albicans dahil olmak üzere oral patojenler üzerinde standart antifungal ilaç amfoterisin-B'den çok daha yüksek antifungal aktivite sergilediğini gösterdi . Ek olarak, önceki çalışmalarda tarçın yaprağı ve kabuğunun ekstraksiyonu Fusarium graminearum , F. proliferatum , Aspergillus fumigatus ve Trichophyton rubrum'a karşı inhibe edici aktivite göstermiştir (Velluti ve diğerleri 2003 ; Velluti ve diğerleri.2004 ; Khan ve Ahmad 2011 ). Carvalho ve ark. ( 2018 ), C. zeylanicum'dan ekstrakte edilen CEO'ların klinik C. albicans suşlarında proteinaz üretimi, germ tüpü oluşumu ve bukkal epitel hücrelerine yapışma gibi bazı virülans faktörlerini inhibe ettiği gösterildi. Ayrıca, önceki çalışmalar, sırasıyla kabuk ve yaprak tarçın esansiyel yağlarının ana bileşenleri olan sinnamaldehit ve öjenolün, test edilen dermatofit suşlarının %80'ini inhibe eden dermatofitozlu hastalardan izole edilen dermatofit suşlarına karşı in vitro olarak test edilmiş aktif olduğunu göstermiştir (Gruenwald ve diğerleri 2010). Bununla birlikte, bildiğimiz kadarıyla, C. albicans'ın neden olduğu enfeksiyonları tedavi etmek için CEO'lardan yararlanma olasılığını gösteren çok az veri vardır ve bugüne kadar C. auris'e karşı EO aktivitesine dair hiçbir kanıt yoktur .

              Bu çalışmanın odak noktası, C. zeylanicum Blume'un yaprak ve kabuğundan ekstrakte edilen yağların C. albicans ve C. auris'e karşı antifungal aktivitelerini ve antihemolitik etkilerini araştırmaktı .

              Git: Yöntemler

              Mantar organizmaları

              Bu çalışmada iki C. albicans suşunu içeren üç organizma kullanıldı : ATCC 10231 ve ATCC 2091 ve bir C. auris suşu : NCPF 8971. C. albicans suşları Southmead Hastanesi, Bristol, BK tarafından sağlanırken C. auris , İngiltere Halk Sağlığı (İngiltere) tarafından işletilen Ulusal Patojenik Mantar Koleksiyonundan (NCPF) satın alınmıştır. Organizmalar, testlerde kullanılana kadar 30 ve 4 °C'de Sabouraud Dextrose agar (SDA, CM0041, Oxoid Ltd., UK) üzerinde tutuldu. Aşı, C. albicans ve C. auris'ten hazırlandı.SDA üzerine plakalanmış ve 30 °C'de 48 saat boyunca ve her deneyden önce inkübe edilmiş kültürler, mililitre başına yaklaşık 106 koloni oluşturan birim (CFU/mL) nihai konsantrasyona sahip 0.5 McFarland kullanılarak standartlaştırıldı . Bu çalışmada kullanılan uçucu yağlar

              Kabuk CEO'su ( Cinnamomum zeylanicum Blume; CBEO), Amphora Aromatics Ltd., UK tarafından araştırma amacıyla bağışlanmıştır ve yaprak CEO'su ( Cinnamomum zeylanicum Blume; CLEO), Freshskin Beauty Ltd., UK'den satın alınmıştır. EO'lar, deney süresi boyunca oda sıcaklığında tutuldu. Gaz kromatografisi kütle spektroskopisi

              Zeng ve ark. ( 2015 ), test edilen yağlardaki bileşen profillerini belirlemek için Agilent 6890 N Gaz Kromatograf sistemi (Agilent Technologies, ABD) kullanılarak gaz kromatografisi kütle spektroskopisi (GC-MS) analizi yapılmıştır. Veri toplama ve analiz, tutma süreleri ve kütle spektrumlarına dayalı olarak Agilent MassHunter yazılımı (Agilent Technologies, ABD) kullanılarak yapıldı. Disk difüzyon tahlili kullanılarak antifungal duyarlılık testi

              Doğrudan iletişim

              Adukwu ve diğerleri tarafından açıklanan agar disk difüzyon yöntemi. ( 2016 ) CEO'ların antifungal özelliklerinin belirlenmesi için kullanılmıştır. Referans antifungal ilaç olarak DMSO (Sigma) içinde çözülmüş 10 μg/mL konsantrasyonlu mikonazol (Sigma, ABD) kullanıldı. Kısaca, 100 μL maya süspansiyonu SDA plakalarına yayıldı ve ardından 10 μL uçucu yağ veya çözünmüş mikonazol ile emprenye edilmiş kağıt diskler (6 mm, Sigma) agar yüzeyinin üzerine yerleştirildi ve plakalar 30 °C'de 48 saat inkübe edildi. . Herhangi bir muamele yapılmayan diskli plakalar referans kontroller olarak kullanıldı. Mantar çiminde ortaya çıkan inhibisyon bölgesinin çapı milimetre cinsinden ölçüldü.

              Disk buharlaşma deneyi

              CEO'ların buhar fazındaki antifungal aktivitesi, disk buharlaştırma tekniği kullanılarak incelenmiştir (Boukhatem ve ark. 2014 ). Kısaca, 100 μL maya süspansiyonu SDA plakalarına yayıldı ve ardından üst kapağın iç yüzeyine 10 μL uçucu yağ veya çözünmüş mikonazol emdirilmiş kağıt diskler (6 mm, Sigma) yerleştirildi. Plaka, buharın sızmasını önlemek için parafilm ile kapatıldı ve hemen kapağın üzerine ters çevrildi. Plakalar 30 °C'de 48 saat inkübe edildi ve inhibisyon bölgesinin çapı milimetre cinsinden kaydedildi. Et suyu seyreltme yöntemi kullanılarak minimum inhibitör konsantrasyonun ve minimum fungisidal konsantrasyonun belirlenmesi

              CEO'ların minimum inhibitör konsantrasyonu (MIC) ve minimum fungisidal konsantrasyonunun (MFC) belirlenmesi için bu çalışmada kullanılan yöntem Adukwu ve ark. ( 2012 ) küçük değişikliklerle. Kısaca, Sabouraud Dekstroz suyu (SDB, Oxoid Ltd., UK), EO emülgatörü olarak kullanılan %0.5 ( h / h ) konsantrasyonda Tween 20 (Sigma, ABD) ile hazırlandı. Hem CBEO hem de CLEO, %4 ila %0,03 ( v / v ) arasında bir konsantrasyon aralığı oluşturmak için Tween 20 ile SDB içinde iki kat seyreltildi). Seyreltilmiş CEO'ların 180 uL miktarı, 20 uL maya süspansiyonu ile 96 oyuklu bir mikrodilüsyon plakasının karşılık gelen oyuklarına aktarıldı. Mayasız EO dilüsyonlarının ve SDB ve maya süspansiyonunun mikroplaka kuyuları, negatif kontroller olarak kullanıldı ve plakalar, 30 °C'de 48 saat inkübe edildi. Uygun inkübasyon süresinden sonra, her kuyucuğun optik yoğunluğu (OD), mikroplaka okuyucu (infinteF200Pro, Tecan, İsviçre) kullanılarak 595 nm'de kaydedildi. MIC, maya büyümesinin engellenmesini sağlayan en düşük CEO konsantrasyonu olarak tanımlandı.

              MFC, %4'ten ( v / v ) %0,03'e ( v / v ) CEO konsantrasyonunun işlenmiş her bir kuyusundan 20 uL'nin etiketli SDA plakalarına aktarılması ve ardından 30 °C'de 48 saat inkübasyonla ölçülmüştür. MFC, mayanın büyümesini engelleyen veya üç CFU'dan daha azının oluşmasına izin veren en düşük CEO konsantrasyonu olarak tanımlandı ve böylece %99.9 fungisidal aktivite elde edildi (Espinel-Ingroff ve ark. 2002 ). CEO'ların C. albicans ve C. auris'in mikromorfolojisi üzerindeki etkisi

              CEO'lara C. albicans ve C. auris'e maruz kalmanın neden olduğu morfolojideki değişiklikleri araştırmak için Leite ve diğerlerinin yöntemlerini uyarladık. ( 2014) bazı değişikliklerle. Yüz mikrolitre (100 μL) maya süspansiyonu, mısır unu agar plakalarına yayıldı ve ardından kağıt disklere (6 mm, Sigma) 10 μL uçucu yağ emdirildi ve agar yüzeyinin üzerine yerleştirildi ve plakalar, 30 °C'de 48 saat inkübe edildi. h. Herhangi bir işlem uygulanmamış diskli agar plakaları referans kontroller olarak kullanılmıştır. Plakalar daha sonra ışık mikroskobu (Olympus, UK), on kat büyütme kullanılarak görüntülendi. İnkübasyonun ardından, inhibe edici bölgenin kenarındaki iki ila üç mantar kolonisi nazikçe çıkarıldı ve temiz bir mikroskop lamı üzerine yerleştirildi. Numune üzerine bir damla Lacto-Fuchsin boyası yerleştirildi ve bir lamel ile kapatıldı. Slaytlar 40 kat büyütmeli ışık mikroskobunda incelendi. Hücre zarı geçirgenliğinin modülasyonu

              CEO maruziyeti ile tedaviyi takiben maya hücre zarlarının bütünlüğünü değerlendirmek için, Khan ve diğ. ( 2013 ) bazı değişikliklerle uyarlanmıştır. Kısaca, 200 μL hücre süspansiyonu, farklı konsantrasyonlarda (CBEO için %0.03, 0.015 ve %0.008 ( v / v ); 0.13, 0.06 ve 0.13, 0.06 ve %0,03 ( v / v) CLEO için). PBS'deki CEO'lar, kontrol olarak PBS'de boş, işlenmemiş hücreler olarak görev yaptı. Plakalar 30 °C'de 24 saat inkübe edildi. İnkübasyon süresinden sonra numuneler santrifüjlendi (1250 rpm, 2 dakika) ve süpernatanlarda hücresel materyalin salınması, hücre süpernatanının 260/280 nm'de (nükleik asitlere ve proteinlere karşılık gelen) spektrofotometrik ölçümü kullanılarak belirlendi. taramalı elektron mikroskobu

              CBEO için %0,03 ve %0,015 ( v / v ) ve %0,13 ve %0,06 ( v / v ) tedavileriyle test suşlarının üç set numunesi hazırlandı.) CLEO için. Herhangi bir işlem görmemiş organizmalardan oluşan kontrol örnekleri de hazırlandı. Mantar kültürleri, SDB'de 48 saat büyütüldü ve numunelerin 100 uL'si steril metal disklere damlatıldı ve mantar büyümesini oluşturmak için 30 °C'de 48 saat inkübe edildi. Numuneler daha sonra glutaraldehit fiksatif kullanılarak sabitlendi. CEO'ların herhangi bir faaliyetini en aza indirmek ve numunelerin görüntülenmesini etkileyebilecek herhangi bir kalıntının temizlenmesine izin vermek için numunelerin periyodik olarak saatlik olarak üç kez PBS ile durulanması gerekiyordu. Bundan sonra, numuneler %20 ila %100 ( v / v ) arasındaki farklı konsantrasyonlarda etanol ve hekzametildisilazan kullanılarak dehidrate edildi. Numuneler daha sonra havada kurutuldu, altınla kaplandı ve FEI Quanta FEG 650 SEM (Thermo Fisher Scientific, ABD) kullanılarak görselleştirildi. Hemolitik aktivitenin değerlendirilmesi

              Candida suşlarının ve CEO'ların hemolitik aktiviteleri

              Candida izolatlarının hemolitik aktivitesini belirlemek için , %3 ( w / v ) glikoz içeren veya içermeyen %7 ( v / v ) at kanı (TCS Biosciences Ltd. UK) içeren SDA ortamı kullanıldı. %4 ( v / v ) ile %0,03 ( v / v ) arasında farklı konsantrasyonlarda 10 μL maya süspansiyonu veya seyreltilmiş CEO'lar) plakalara üç kopya halinde aşılandı; bunlar daha sonra 37 °C'de 24 saat aerobik durumda inkübe edildi. İnkübasyondan sonra aşılama yerinin etrafındaki şeffaf/yarı şeffaf bölge, pozitif hemolitik aktivite olarak kabul edildi. Koloninin çapının yarı saydam hemoliz bölgesinin çapına oranı (mm), hemolitik indeks olarak Wan ve ark. ( 2015 ).

              CEO'ların Candida izolatlarının hemolitik aktivitesi üzerindeki etkisi

              Test edilen suşlarda hemolizin üretiminin inhibisyonu, Manns ve diğ. ( 1994 ) bazı değişikliklerle. Kısaca, Candida izolatları, %8 ( v / v ) glikoz ve CBEO ile %0.03, 0.015 ve %0.008 ( v / v ) nihai konsantrasyonlarda ve CLEO ile %0.13, 0.06 ve %0.03 ( v / v ) nihai konsantrasyonlarda CLEO ile SDB'de büyütüldü. ) ve 37 °C'de 48 saat inkübe edildi. CEO'suz SDB, kontrol olarak kullanıldı. Süpernatan, 5000 rpm'de 30 dakika santrifüj edilerek inkübe edilmiş brot kültürlerinden toplandı. At kanından (TCS Biosciences Ltd. UK) steril PBS içinde süspanse edilmiş ve %5 () ile zenginleştirilmiş yeni yıkanmış steril RBC'lerw / v ) glukoz süpernatant ile 1:1 oranında karıştırıldı ve 37°C'de 3 saat inkübe edildi. Tüpler 2000 rpm'de 10 dakika santrifüjlendi ve 540 nm'de okundu. Ortalama absorbans değerleri, işlenmemiş kontrollere göre işlenmiş numunelerdeki hemolizin üretimindeki azalma yüzdesini hesaplamak için kullanıldı.

              Git: Sonuçlar

              Kimyasal bileşim analizi (GC-MS)

              Kullanılan CBEO ve CLEO'nun kalitatif ve kantitatif bileşimi Tablo'da gösterilmiştir.​Tablo 1.1. Tanımlanan bileşenlerin sayısı, tüm EO'nun yaklaşık %93'ünü temsil eden CLEO'da, yaklaşık %95'i temsil eden CBEO'dan daha fazlaydı. CLEO, %62.57'lik yüksek miktarlarda öjenol ile karakterize edilirken, CBEO'da bu bileşen yalnızca %5.28 idi. CBEO'nun ana bileşeni trans -sinnamaldehit (%66.43) idi ve bu bileşiğin <%2'si CLEO'da tanımlandı. tablo 1

              CBEO ve CLEO'nun ana bileşenleri gösteren GC-MS analizi
              Bisiklo [3.1.1] hept-2-en, 3,6,6-trimetil- 2.54 –
              Alfa-Phellandrene 2.27 –
              Benzen, 1-metil-4-(1-metiletil)- 1.7 –
              Sikloheksen, 1-metil-5-(1-metiletenil)-, (R)- 1.43 –
              1,6-Oktadien-3-ol, 3,7-dimetil- 3,79 7.61
              Öjenol 62.57 5.28
              karyofilen 4.17 –
              Benzil benzoat 4.09 2,86
              Fenol, 2-metoksi-4-(2-propenil)-, asetat 3.49 –
              trans- Sinnamaldehit 1.92 66.43
              1,3-Benzodioksol, 5-(2-propenil)- 1.73 –
              2-Propen-1-ol, 3-fenil-, asetat 2.3 –
              okaliptol 0,33 6.63
              Bütan, 2-metil- – 4.74
              benzaldehit 0,27 1.04
              EO'daki toplam bileşenlerin yüzdesi 92.6 94.59
              Ayrı bir pencerede aç Antifungal duyarlılık taraması

              Antifungal duyarlılık testlerinden elde edilen sonuçlar Tabloda özetlenmiştir.​Tablo 2.2. Hem CBEO hem de CLEO, kandidiyazis gibi maya kaynaklı olanlar da dahil olmak üzere cilt enfeksiyonlarının tedavisinde tipik olarak kullanılan bir antifungal ilaç olan mikonazol ile karşılaştırıldığında test edilen suşlara karşı daha güçlü antifungal aktivite göstermiştir. CBEO , doğrudan disk difüzyon ve disk buharlaşma deneylerinde C. albicans ve C. auris'e karşı CLEO ile karşılaştırıldığında daha yüksek inhibitör aktivite göstermiştir (Tablo​(Tablo 2).2). CBEO, CLEO'dan (doğrudan temas) yaklaşık iki kat daha etkiliydi ve CLEO'dan (buhar tahlili) yaklaşık 2 ila 3,5 kat daha etkiliydi. Tablo 2

              48 saatlik inkübasyondan sonra bark CEO'su, yaprak CEO'su ve mikonazol (10 μg/mL) tarafından C. albicans ve C. auris'te mantar büyümesinin inhibe edici bölgeleri (mm)
              C. albicans ATCC 10231 53.00 1.68 26.32 0,67 24.33 1.37
              C. albicans ATCC 2091 Doğrudan iletişim 56.68 0,85 30.17 0,76 31.33 0.97
              C. auris NCPF 8971 70.40 1.53 39.67 1.00 32.82 0.39
              C. albicans ATCC 10231 55.52 0,65 15.08 0,82 yok yok
              C. albicans ATCC 2091 buhara maruz kalma 59,72 1.07 18.90 0,33 yok yok
              C. auris NCPF 8971 77.37 1.72 35.40 1.08 yok yok
              Ayrı bir pencerede aç
              Sonuçlar, üç kopya halinde gerçekleştirilen üç bağımsız deneyden alınmıştır ( N  ​​= 3) İnhibitör ve mantar öldürücü aktivite

              Tablodaki Sonuçlar​Tablo 33C. albicans ve C. auris'in düşük konsantrasyonlarda CBEO ve CLEO'ya duyarlı olduğunu ve her iki maya türünün de %0,03'ün ( h / h ) altındaki konsantrasyonlarda gözlemlenen MIC ve MFC aktivitesi ile CBEO'ya daha fazla duyarlılık gösterdiğini gösterdi . CLEO'nun Candida spp. %0,06 ve %0,13 ( h / h ) arasındaki düşük konsantrasyonlarda C. albicans ve C. auris suşlarının büyümesinin önlenmesinde etkili olmuştur ; ancak, CLEO'nun fungisidal aktivitesi %0.25 ( h / h ) olarak gözlenmiştir. Tablo 3

              Kabuk ve yaprak CEO'sunun (MIC'ler ve MFC'ler) C. albicans ve C. auris'e karşı antifungal aktivitesi
              C. albicans ATCC 10231 < 0,03 < 0,03 0.13 0,25
              C. albicans ATCC 2091 < 0,03 < 0,03 0,06 0,25
              C. auris NCPF 8971 < 0,03 < 0,03 0,06 0,25
              Ayrı bir pencerede aç
              Sonuçlar, üç kopya halinde gerçekleştirilen üç bağımsız deneyden alınmıştır ( N  ​​= 3) CEO'ların C. albicans ve C. auris'in mikromorfolojisi üzerindeki etkisi

              Mısır unu agar tahlilinden elde edilen sonuçlar, C. albicans suşlarının ağırlıklı olarak filamentlerden oluştuğunu ve EO'lara maruz kaldıktan sonra, her iki C. albicans suşunda, özellikle C. albicans ATCC 2091'de hif oluşumunun belirgin şekilde azaldığını gösterdi. Her iki CEO'ya maruz kalmadan önce ve sonra C. auris izolatı gözlendi. CEO'ların hücre zarı geçirgenliği üzerindeki eylemleri

              CBEO ve CLEO'nun C. albicans ve C. auris üzerindeki etki mekanizması, hem CBEO hem de CLEO ile muameleden sonra hücresel içerik sızıntı deneyi ve taramalı elektron mikroskobu (SEM) morfolojik analizi ile belirlendi. Hücresel içerik sızıntı testi, Candida spp. nükleik asit ve protein salınımı, yani hücre lizisi ile gösterilen, soruşturma altındaki CEO'lar tarafından hasar gördü (Şek. 1ve​ve 2).2). Bu sonuçlar, hücre zarının geri çekildiğini ve hücre yüzeylerinin büzüldüğünü ortaya koyan SEM görüntüleri ile desteklenmiştir (Şekil 1b). 3).
              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 253_2020_10829_Fig1_HTML.jpg
              Şekil 1
              C. albicans ve C. auris'ten ( a) nükleik asit salımı, OD 260 nm ve ( b) protein salımı OD 280 nm'nin değerlendirilmesi , %0.008, 0.015 ve %0.03'te ( v / v ) tarçın kabuğu esansiyel yağı ile muameleden sonra. Bu deney,  çubuklar ortalama değerleri (± SE) gösteren üç ayrı durumda ( N = 3) gerçekleştirildi.

              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 253_2020_10829_Fig2_HTML.jpg
              İncir. 2
              C. albicans ve C. auris'ten ( a) nükleik asit salımı, OD 260 nm ve ( b) protein salımı OD 280 nm'nin değerlendirilmesi , %0.03, 0.06 ve %0.13'te ( v / v ) tarçın yaprağı esansiyel yağı ile muameleden sonra . Bu deney,  çubuklar ortalama değerleri (± SE) gösteren üç ayrı durumda ( N = 3) gerçekleştirildi.

              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 253_2020_10829_Fig3_HTML.jpg
              Şekil 3
              C. albicans ATCC 10231 (sütun 1), C. albicans ATCC 2091 (sütun 2) ve C. auris NCPF 8971'in (sütun 3) taramalı elektron mikrofotoğrafları . ( a – c) İşlem görmemiş hücreler; ( d – f) Bark CEO %0,03 ( v / v ) işlenmiş hücreler; ( g – i) Bark CEO %0,015 ( v / v ) işlenmiş hücreler; ( j – l) yaprak CEO %0,13 ( v / v işlenmiş hücreler; ( m – o)Beyaz oklar, tedaviler altında hasar görmemiş veya hafif hasar görmüş mantar hücrelerini gösterir. Büyütme, × 5000

              Hücre içeriği sızıntı deneyinde, OD 260 nm'deki artış nükleik asit salınımını gösterirken OD 280 nm protein salınımını gösterir. Test organizmalarının CBEO'ya maruz kalmasının ardından, nükleik asit ve protein salımı gözlendi ( p  < 0.05). Ek olarak, konsantrasyon ne kadar yüksek olursa, nükleik asit ve protein sızıntısı da o kadar büyük olur. Figür​Şekil 22ayrıca MIC'de CLEO'ya maruz kalmanın ardından ve MIC'in altındaki konsantrasyonlarda hücre içeriği sızıntısı gösterir; ancak hücre içeriği sızıntısı, %0.06 ve %0.03'te ( v / v )  işlenmemiş numunelerden önemli ölçüde farklı değildi ( p > 0.05 ).

              CBEO'nun MIC ve MFC'sinin < %0,03 ( v / v ) ve %0,015'te ( v / v ) test konsantrasyonu aralığının altında olduğu bulundu; üç test organizması zarar görmüş ve bu konsantrasyonlara maruz kaldıklarında (SEM ile gözlemlenmiştir) şişkinlik ve bütünlüklerini kaybetmişlerdir. C. albicans ATCC 2091 ve C. auris NCPF 8971, CLEO'nun %0.13'ünde ( v / v ) öldürülürken, kontrol hücreleri şişkin ve düz hücre zarıyla bütün halde göründü (Şekil 1a).3a-c). Figür​Figür 33(mo), hücreler %0,06'da CLEO'ya ( v / v ; C. albicans ATCC 2091 ve C. auris NCPF 8971 için MIC ) maruz kaldığında bazı hasar görmemiş hücreleri gösterir ; bu, bu konsantrasyonda ve %0,13'te fungistatik aktivitenin bir teyididir ( v / v ), hücreler CLEO tarafından hasar gördü. Candida izolatlarının hemolizin aktiviteleri

              Glikozla zenginleştirilmiş agar plakalarında, iletilen ışıkla bakıldığında maya "kolonisini" çevreleyen iki farklı hemoliz türü gözlendi. İlki, beta hemolize özdeş tamamen yarı saydam bir halkaydı ve ikincisi, alfa hemolize benzer yeşilimsi siyah bir haleydi. 24 saatlik inkübasyonda, glikoz içermeyen plakalarda sadece alfa hemoliz gözlendi. Bununla birlikte, 48 saatlik inkübasyondan sonra, glikoz içermeyen plakalarda sadece beta halkaları gözlendi. Glikozla zenginleştirilmiş plakalarda test edilen üç suşta glikoz içermeyen plakalara kıyasla daha yüksek hemolitik aktivite açıkça gözlemledik.

              Tablodaki Sonuçlar​Tablo44Candida izolatlarının hemolizin aktivitelerini gösterir . Hem glikozla zenginleştirilmiş hem de glikozsuz plakalarda hemoliz aktivitesi, 24 saatlik inkübasyondan sonra 15,51 ± 0,36 ve 21,46 ± 0,6 mm olan glikozla zenginleştirilmiş plakalardaki alfa ve beta halkalarının ortalama çapları ile C. albicans ATCC 10231'de daha yüksekti. , sırasıyla. Bu arada, glikozsuz agar plakalarında, C. albicans ATCC 10231'in alfa halkalarının ortalama çapı 11,42 ± 0,31 mm idi. 48 saatlik inkübasyondan sonra , glikoz ilaveli plakalarda C. albicans ATCC 10231'in alfa ve beta halkalarının ortalama çapları, test edilen üç boya arasında hala en yüksek olanıydı. C. albicans'ın beta halkalarının ortalama çapıGlikozsuz plakalarda ATCC 10231, 16.63 ± 0.41 mm idi. Buna karşılık, hemoliz C. auris NCPF 8971'de daha düşüktü ve 24 saatlik inkübasyondan sonra glikozla zenginleştirilmiş plakalardaki ortalama alfa ve beta halkaları sırasıyla 10,61 ± 0,4 ve 16,43 ± 0,43 mm idi. 48 saatlik inkübasyondan sonra, glikozsuz plakalarda C. auris NCPF 8971'in beta halkalarının ortalama çapı 14,56 ± 0,23 mm olmuştur. Tablo 4

              C. albicans ATCC 10231, C. albicans ATCC 2091 ve C. auris NCPF 8971'in 24 ve 48 saatlik inkübasyondan sonra glukozla zenginleştirilmiş ve glukoz zenginleştirme olmadan hemolitik aktivitesini temsil eden a- ve β-halkalarının çapları (mm)
              Candida albicans ATCC 10231 3 24 15,51 (± 0,36) 21,46 (± 0,60)
              0 11,42 (± 0,31) 0 (hemolitik olmayan)
              3 48 17,72 (± 0,15) 28,83 (± 0,46)
              0 0 (hemolitik olmayan) 16,63 (± 0,41)
              Candida albicans ATCC 2091 3 24 14,26 (± 0,33) 20,7 (± 0,43)
              0 10,96 (± 0,27) 0 (hemolitik olmayan)
              3 48 17,7 (± 0,35) 26,2 (± 0,75)
              0 0 (hemolitik olmayan) 16,38 (± 0,37)
              Candida auris NCPF 8971 3 24 10,61 (± 0,40) 16,43 (± 0,43)
              0 9,7 (± 0,16) 0 (hemolitik olmayan)
              3 48 15,11 (± 0,36) 24,54 (± 0,43)
              0 0 (hemolitik olmayan) 14,56 (± 0,23)
              Ayrı bir pencerede aç
              Sonuçlar, üç kopya halinde gerçekleştirilen üç bağımsız deneyden alınmıştır ( N  ​​= 3) Kabuk ve yaprak CEO'larının C. albicans ve C. auris'in hemolitik aktivitesi üzerindeki etkileri

              Bir antifungal ajan, mantar hücreleri tarafından salınan virülans faktörlerini artırabilir veya azaltabilir (Khan ve Ahmad, 2013 ). Bir antifungal bileşiğin klinik performansı, yalnızca fungisidal veya fungistatik aktivitesi ile değil, aynı zamanda virülans faktörü salınımı üzerindeki etkisiyle de belirlenir (Lopes ve ark. 2013 ). Bu testteki CEO konsantrasyonunun, araştırılmakta olan maya türleri ile mücadeleyi takiben hemolitik aktiviteden doğrudan sorumlu olmadığından emin olmak için, CBEO ve CLEO'nun hemoliz aktivitesini test etmek için at kanlı agar üzerinde deneyler yapıldı (Şekil 1a). 4). Sonuçlar, her iki CEO'nun da yüksek konsantrasyonda hemolitik aktiviteye neden olabileceğini gösterdi; ancak, CBEO için ≤ %1 ( v / v ) ve CLEO için < %0,5 ( v / v ) konsantrasyonlarında , her iki CEO da in vitro herhangi bir hemolitik aktiviteye neden olmadı.
              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 253_2020_10829_Fig4_HTML.jpg
              Şekil 4
              Farklı bark CEO (1, 2) ve yaprak CEO (3, 4) konsantrasyonlarının neden olduğu at kanlı agarın (%3 w/v glikoz ile desteklenmiş) hemolizini gösteren fotoğraflar. Panel a, saf kabuk CEO'sunu (a) ve saf yaprak CEO'yu (k) pozitif kontrol olarak görev yaptı; Sabouraud dekstroz suyu +%0.5 Tween 20, negatif kontrol olarak kullanıldı (j); havlama CEO %4 (b); havlama CEO %2 (c); havlama CEO %1 (d); havlama CEO %0,5 (e); havlama CEO %0,25 (f); havlama CEO %0,125 (g); havlama CEO %0,06 (h); kabuk %0,03 (i); yaprak CEO %4 (l); yaprak CEO %2 (m); yaprak CEO %1 (n); yaprak CEO %0,5 (o); yaprak CEO %0,25 (p); yaprak CEO %0,125 (q); yaprak CEO %0,06 (r); ve yaprak CEO %0,03 (s)

              CBEO ve CLEO'nun C. albicans ve C. auris'in hemolitik aktivitesi üzerindeki inhibe edici etkilerinden elde edilen sonuçlar, Şekil 1'de sunulmaktadır. 5. Her iki CEO ile farklı konsantrasyonlarda yapılan tedaviden sonra, test edilen tüm organizmalarda hemolitik aktivite azaldı. %0,03 ( v / v ) ve %0,015 ( v / v ) CBEO , test edilen suşlarda hemolizi genel olarak %20'nin altına düşürdü ve %0,008'de ( v / v ) hemoliz yaklaşık %30 azaldı (Şekil.​(Şek.5a).5a). Aynı konsantrasyonda, hemoliz %80'in üzerinde azaltılmıştır. CLEO ayrıca MIC'de C. albicans ve C. auris'in hemolitik aktivitesini ve 2x MIC konsantrasyonunu azaltmıştır (Şekil 1).​(Şek.5b).5b). Alt inhibitör konsantrasyonda, 0.5x MIC, işlenmiş ve işlenmemiş suş arasında önemli bir fark yoktu ( C. albicans ATCC 10231; p  > 0.05).
              İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 253_2020_10829_Fig5_HTML.jpg
              Şekil 5
              Farklı konsantrasyonlarda CBEO ( a ) ve CLEO ( b )'nin C. albicans ATCC 10231; C. albicans ATCC 2091 ve C. auris NCPF 8971. Bu deney,  ortalama değerleri (± SE) gösteren çubuklarla üç ayrı durumda ve üç kez ( N = 3) gerçekleştirildi.

              Git: Tartışma

              Kimyasal bileşim analizi (GC-MS)

              Bu çalışmadaki GC-MS sonuçları, Mayaud ve ark. ( 2008 ) makalelerinde analiz edilen CLEO'da bulunmayan sinnamaldehit dışında. Önceki çalışmalar , sırasıyla CBEO ve CLEO'nun temel bileşenleri olan hem trans -sinnamaldehit hem de öjenolün bakteri ve mantarlara karşı antimikrobiyal olduğunu göstermiştir. Doyle ve Stephens'ın ( 2019 ) yakın tarihli bir inceleme makalesinde, trans -sinnamaldehitin farklı yöntemlerle bakteri hücrelerine zarar vermekten sorumlu olduğu bulundu; hücre salma aktivitesi, anti-quorum sensing aktivitesi, ATP üzerindeki etkisi vb. Eugenol'ün ise Candida albicans'ta morfolojik değişikliklere ve hasara neden olduğu gösterilmiştir.-yapışkan hücreler ve biyofilmler (He ve ark. 2007 ). Bildiğimiz kadarıyla, yeni patojen C. auris'e karşı EO'ların etkileri hakkında çok az şey biliniyor ve CEO'ların bu patojene karşı etkileri hakkında yayınlanmış bir rapor yok. CBEO ve CLEO'nun antifungal aktivitesi

              C. albicans ve C. auris'in mantar çimleri ile temas halindeyken ve buhar fazında kabuk ve yaprak CEO'nun antifungal etkilerine duyarlılığı belirlendi . Sonuçlar, Brnawi ve ark. ( 2018 ) ve Ranasinghe ve diğerleri. ( 2002 ), CBEO'nun CLEO'dan daha etkili bir antimikrobiyal olduğunu bulan. EO'ları kullanan antimikrobiyal buhar araştırmalarına yönelik araştırmalar ilgi kazanıyor ve sonuçlarımız, CBEO'nun buhar fazında güçlü antimikrobiyal aktivite göstermesi ve CLEO'nun doğrudan temasta büyük inhibisyon üretmesi ile bunu daha da destekliyor. CBEO'nun ana bileşeni trans -sinnamaldehittir ve CLEO'nun ana bileşeni öjenoldür. Sanla-Ead ve ark. ( 2012) trans-sinamaldehit ve öjenolün antifungal aktivitesini araştırdı ve trans - sinnamaldehitin buhar fazında daha güçlü antifungal aktivite gösterdiğini buldu, bu da CBEO'nun CLEO ile karşılaştırıldığında buhar fazında neden daha etkili olduğunu açıklayabilir. Buhar difüzyonu yoluyla antimikrobiyal aktivite, örneğin klinik ortamlarda dekontaminasyon yoluyla hava kalitesini iyileştirmek için enfeksiyonların tedavisi ve yönetimi için CEO'lar ve diğer uçucu yağlar için farklı bir dağıtım modu sunar.

              Hem CBEO hem de CLEO, çok düşük konsantrasyonlarda fungisidal özellikler göstermiştir. C. auris , yüksek bulaşabilirlik, tanımlama güçlükleri, antifungal ilaçların yanlış kullanımı ve yüksek mortaliteye yol açan tedavi başarısızlıkları nedeniyle terapötik seçenekleri anlamak ve belirlemek için acil çaba gerektiren kötü şöhretli bir nozokomiyal patojen olarak tanımlanmıştır (Sears ve Schwartz 2017 ; Sardi ve diğerleri 2018 ). Bu önemli patojen için sınırlı antifungal tedavi seçenekleri, yeni tedavilerin geliştirilmesini gösteren ve önemli bir adım olarak mevcut konvansiyonel antimikrobiyallere bağımlılığı azaltan küresel antimikrobiyal direnç stratejileri doğrultusunda yeni alternatif tedaviler geliştirme ihtiyacı yaratmaktadır. CEO'ların C. albicans ve C. auris'in mikromorfolojisi üzerindeki etkisi

              Çimlenme, Candida patogenezine katkıda bulunduğu bilinen başlıca virülans faktörlerinden biri olarak kabul edilir (Larkin ve ark. 2017 ). C. albicans'ta virülans gen ekspresyonu , maya formundan hif formuna geçiş kabiliyeti ile bağlantılıdır (Gow ve ark. 2002 ). C. albicans'ta mayadan hifa geçişin virülansı arttırdığı bilinmektedir çünkü hifler endotel hücrelerini kırmak ve onlara zarar vermek için mekanik kuvvet uygulayabilir (Thompson ve ark. 2011 ). Ayrıca makrofajlar ve nötrofiller, C. albicans hyphae'nin büyümesiyle parçalanabilir (Lo ve ark. 1997 ). CEO'ların varlığında, C. albicans'ta hif oluşumu engellendiATCC 2091 suşu, hif oluşumu virülans faktörlerinin salınmasıyla ilişkili olduğu için EO'nun potansiyel bir etki mekanizmasını öne sürer. Bulgular ayrıca benzer test koşulları altında C. auris NCPF 8971'in çimlenmediğini, hif oluşturmadığını veya klamidospor üretmediğini gösterdi. Candida'nın endotel hücrelerini istila etme yeteneği, kandidemi ve kandidiyaza neden olmada önemli olduğundan, C. auris NCPF 8971'in hif oluşturamaması, diğer çalışmalarda açıklanan virülansın muhtemelen başka faktörlerin bir sonucu olduğunu ve daha fazla araştırma gerektirdiğini düşündürür. CEO'ların hücre zarı geçirgenliği üzerindeki eylemleri

              CBEO ve CLEO'nun C. albicans ve C. auris üzerindeki etki mekanizması , hücre yüzeylerinin büzülmesi ve hücrelerin parçalanmasına yol açan sitoplazmanın geri çekilmesi ile açıkça görülen, zarfın hasar görmesiydi. Ek olarak, Candida hücrelerinin zar hasarlarının seviyesi, kullanılan CEO'ların konsantrasyonu ile ilişkilidir. Bu bulgu, hem CBEO'nun hem de CLEO'nun zar yıkıcı etkisinin yağların konsantrasyonuna bağlı olduğunu düşündürür. Bu sonuç, hücre dışı ortamda nükleotit ve protein seviyesindeki artışla yeniden doğrulandı. Khan ve ark. ( 2013 ), mantar hücrelerinin hücre duvarı ve hücre zarı gibi membranöz yapılarının trans'ın hedef bölgeleri olduğunu öne sürdü .-sinnamaldehit ve öjenol. Bu aktivite, kısmen, bu bileşiklerin , farklı zar katmanlarının yapısının bozulmasına ve daha sonra geçirgenliğe yol açan, plazma zarının lipid çift tabakasına bölünmeleri için lipofilik özelliklerinden kaynaklanabilir (Knobloch ve diğerleri , 1989 ). Shahina ve ark. ( 2018 ), atomik kuvvet mikroskobu (AFM) görüntüleme, lazer taramalı konfokal Mikroskopi (LSCM) görüntüleme ve Kongo kırmızısı boyama tekniklerini kullanarak, C. albicans'ta hücre yüzeyi pul pul dökülmesini, değişen ince yapıyı, gecikmiş hücre döngüsünü ve azalmış hücre duvarı bütünlüğünü gösterdi.CBEO'ya maruz kalmanın ardından hücreler. Çalışmalarında bulgular, yalnızca sinnamaldehitin hücre zarı ve duvar bütünlüğünü tehlikeye atma yeteneğine sahip olmadığını, aynı zamanda limonen, öjenil asetat, linalool ve benzil benzoat gibi CBEO'nun küçük bileşenlerinin de CBEO antifungal aktivitesine diğer etki yollarıyla katkıda bulunduğunu ileri sürdü. anafazda iğ kusurunun ortaya çıkarılması veya hücre döngüsünün durdurulması. CEO'ların Candida spp. üzerindeki diğer etki alanlarını belirlemek için , örneğin transmisyon elektron mikroskobu, sorbitol koruma testi veya akış sitometrisi gibi başka testler gereklidir. Bununla birlikte, bu çalışmanın sonuçları hem CBEO hem de CLEO'nun C. albicans'a ve ilk kez C. auris'e karşı antifungal aktivitesini açıkça göstermektedir . Her iki türCandida , morfoloji değiştirme eyleminden bağımsız olarak, düşük EO konsantrasyonlarına maruz kaldığında hücre zarı yapılarına önemli ölçüde zarar vermiştir. CEO'ların antihemolitik etkisi

              C. auris'in nozokomiyal kan dolaşımı enfeksiyonlarının büyük bir kaynağı olduğu gösterilmiş olmasına rağmen bugüne kadar çok az sayıda çalışma C. auris'in hemolitik aktivitesini araştırmıştır (Sardi ve ark. 2018 ). Hemolitik aktivite çeşitli çalışmalarda gösterilmiştir ve C. albicans'ın patogenezinde bir faktördür (Luo ve ark. 2001 ; Favero ve ark. 2014 ). Çalışmamızda hem C. albicans hem de C. auris'in glukozla zenginleştirilmiş kan ortamında hemoliz ürettiği, bunun glukoz varlığında hemoliz aktivitesi açısından önemli olduğu, diyabetik hastalarda Candida patogenezinde olası bir faktör olarak gösterilmiştir (10). Malcok ve diğerleri 2009). Bununla birlikte, MIC ve alt MIC'lerde CEO'ların varlığıyla, hem CBEO hem de CLEO, C. albicans ve C. auris'te hemolizin faktörlerinin üretimini inhibe etti; bu, EO'ların Candida spp . CEO'ların huzurunda hifal forma geçişin engellendiği mısır unu agar tahlilinden elde ettiğimiz ilk bulgularımızı destekliyor. Nayak ve ark. ( 2013 ), C. albicans'ta artmış hemolitik aktivite vardır .kandidiyazis enfeksiyonları sırasında hifal istilasını kolaylaştıran hemolizine yol açan ve hemolizin salgılanmasına yol açan demir alımı ile karakterize edilir. Bu nedenle, hemolitik aktivitenin azaltılması, spordan hiflere geçiş yapan morfolojinin önlenmesi ve zara zarar verilmesi, tarçın EO'larının Candida türlerine karşı etki mekanizmalarından bazıları olarak burada gösterilmektedir . Tarçın EO'nun bir antifungal ajan olarak potansiyeli, hem yaprak hem de kabuk yağlarının düşük konsantrasyonlarında C. albicans ve C. auris'e karşı inhibitör ve fungisidal etki ile de belirgindir. Elcocks ve ark . ( 2020) ve iki zahmetli patojenik Candida türüne karşı bu tür umut verici eylemlerle, bu EO'yu kandidiyazis enfeksiyonları için bir tedavi seçeneği olarak daha fazla keşfetmeye açık bir ihtiyaç vardır.

              Özetle, burada bildirilen bulgular ilk kez hem kabuk hem de yaprak CEO'larının C. albicans ile birlikte yeni bulunan bir Candida türü olan C. auris'e karşı antifungal aktivite gösterme potansiyelini göstermektedir . Bu yağların SEM analizi ile belirlenen mantar hücrelerine karşı etki şekli, mantar hücrelerinin zar yapılarına zarar verme yeteneklerini vurgulamaktadır. Bu çalışmada, test edilen Candida suşları ve yüksek konsantrasyonlardaki CEO'ların tümü hemolitik aktivite göstermiştir. MIC ve alt MIC'lerde, hem kabuk hem de yaprak CEO'ları, C. albicans ve C. auris'te çimlenme ve hemolizin faktörlerini azaltmıştır.. CEO'ların potansiyel olarak toksik etkilerini değerlendirmek için daha fazla in vivo araştırmaya ihtiyaç vardır; bununla birlikte, antifungal ve anti-hemolitik aktivite, hem klinik hem de endüstriyel uygulamalarda antifungal terapötik müdahalelerin araştırılmasında başka bir ilginç alan ortaya çıkarmaktadır.

              Git: teşekkürler

              Yazarlar, Taramalı Elektron Mikroskobu ve GC-MS analizi ile teknik destek için UWE Bristol'deki Biyobilim Araştırma Merkezi laboratuvarlarından Dr. David Patton ve Bay Paul Bowdler'a teşekkür etmek isterler.

              Git: Yazar katkıları

              Hoang NH Tran: katkı: laboratuvar deneyleri gerçekleştirdi ve yazma sürecine dahil oldu; roller: kavramsallaştırma, araştırma, veri iyileştirme, görselleştirme ve yazma—orijinal taslak. Lee Graham: katkı: araştırma tasarımına, eleştirisine ve yazımına katkıda bulundu; roller: metodoloji, yazma—inceleme ve düzenleme. Emmanuel C. Adukwu: katkı: araştırmayı tasarladı ve denetledi ve verilerin yazılması ve değerlendirilmesine dahil oldu; roller: kavramsallaştırma, denetleme, görselleştirme ve yazma—inceleme ve düzenleme.

              Git: Veri kullanılabilirliği

              Uygulanamaz.

              Git: Etik standartlara uyum

              Çıkar çatışması
              Yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler.

              Etik onay ve katılım onayı
              Uygulanamaz.

              yayın izni
              Uygulanamaz.

              Git: Dipnotlar


              Çalışma, West of England Üniversitesi, Coldharbour Lane, Bristol, BS16 1QY UK, Biosciences Araştırma Merkezi'nde gerçekleştirildi.


              yayıncının notu

              Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


              Git: Katılımcı Bilgileri

              Hoang NH Tran, E-posta: moc.liamg@hhnt.nartgnaoh .

              Lee Graham, E-posta: ku.ca.ewu@maharg.eel .

              Emmanuel C. Adukwu, E-posta: ku.ca.ewu@uwkuda.leunamme .

              Git: Referanslar

              • Adukwu EC, Allen SC, Phillips CA. Limon otu ( Cymbopogon flexuosus ) ve greyfurt ( Citrus paradisi ) esansiyel yağlarının beş Staphylococcus aureus suşuna karşı anti-biyofilm aktivitesi . J Appl Microbiol. 2012; 113 :1217–1227. doi: 10.1111/j.1365-2672.2012.05418.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Adukwu EC, Bowles M, Edwards-Jones V, Bone H. Limon otu esansiyel yağının ( Cymbopogon flexuosus ) ve saf sitralin antimikrobiyal aktivitesi, sitotoksisitesi ve kimyasal analizi. Appl Microbiol Biotechnol. 2016; 100 :9619–9627. doi: 10.1007/s00253-016-7807-y. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Almeida R, Navarro D, Barbosa-Filho J (2001) Merkezi analjezik aktiviteye sahip bitkiler. Phytomed 8:310–322. 10.1078/0944-7113-00050 [ PubMed ]
              • Amorati R, Foti MC, Valgimigli L. Uçucu yağların antioksidan aktivitesi. J Tarım Gıda Kimyası 2013; 61 :10835–10847. doi: 10.1021/jf403496k. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Aneja KR, Joshi R, Sharma C. Dalchini'nin ( Cinnamomum zeylanicum kabuğu) ekstrelerinin bazı diş çürüğü patojenleri üzerindeki antimikrobiyal aktivitesi. J Ecz. Res. 2009; 2 :1387–1390. [ Google Akademik ]
              • Bajpai VK, Jung IY, Sun CK. Nandina domestica Thunb'un uçucu yağının ve çeşitli organik özlerinin antifungal potansiyeli . Cilt bulaşıcı mantar patojenlerine karşı. Appl Microbiol Biotechnol. 2009; 83 :1127–1133. doi: 10.1007/s00253-009-2017-5. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Ben-Ami R, Berman J, Novikov A, Bash E, Shachor-Meyouhas Y, Zakin S, Maor Y, Tarabia J, Schechner V, Adler A, Finn T. Çoklu ilaca dirençli Candida haemulonii ve C. auris , Tel Aviv, İsrail. Emerg Infect Dis. 2017; 23 :195–203. doi: 10.3201/eid2302.161486. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Boukhatem MN, Ferhat MA, Kameli A, Saidi F, Kebir HT. Güçlü bir anti-inflamatuar ve antifungal ilaç olarak limon otu ( Cymbopogon citratus ) esansiyel yağı. Libya J Med. 2014; 9 :25431. doi: 10.3402/ljm.v9.25431. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Brnawi WI, Hettiarachchy NS, Horax R, Kumar-Phillips G, Seo HS, Marcy J. Yaprak ve ağaç kabuğundan elde edilen tarçın esansiyel yağlarının çilek sallamasında antimikrobiyal aktivite ve duyusal kabul edilebilirlik açısından karşılaştırılması. J Gıda Bilimi 2018; 83 :475–480. doi: 10.1111/1750-3841.14041. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Brown GD, Netea MG (2007) Mantar enfeksiyonlarının immünolojisi. Springer, Dordrecht. 10.1007/1-4020-5492-0
              • Chen Y, Zeng H, Tian J, Ban X, Ma B, Wang Y. Anethum graveolens tohumlarından Candida albicans'a karşı uçucu yağın antifungal mekanizması . J Med Microbiol. 2013; 62 :1175–1183. doi: 10.1099/jmm.0.055467-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Carvalho PCL, Sá NP, Lacerda ICA, Pataro C, Rosa LH, Alves RS, Lyon JP, Rosa CA, Johann S (2018) Cinnamomum esansiyel yağı ile Candida albicans klinik suşlarının virülans faktörlerinin virülans faktörlerinin tarçın inhibisyonunun anti-kandida aktivitesi zeylanicum . PSM Microbiol 3:4–12
              • Chowdhary A, Voss A, Meis J. Çoklu ilaca dirençli Candida auris : 'yeni çocuk hastaneyle ilişkili enfeksiyonlara engel mi? J Hastane Enfeksiyonu. 2016; 94 :209–212. doi: 10.1016/j.jhin.2016.08.004. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Doyle AA, Stephens JC (2019) Antibakteriyel ajanlar olarak sinnamaldehit ve türevlerinin gözden geçirilmesi. Fitoterapi 11:104405. 10.1016/j.fitote.2019.104405 [ PubMed ]
              • Elcocks E, Spencer-Phillips P, Adukwu E. Tarçın kabuğu esansiyel yağının Pseudomonas aeruginosa'ya karşı hızlı bakterisidal etkisi . J Appl Microbiol. 2020; 128 :1025–1037. doi: 10.1111/jam.14538. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Espinel-Ingroff A, Chaturvedi V, Fothergill A, Rinaldi M. Yaygın olmayan küfler için yeni ve yerleşik antifungal ajanların MIC'lerini ve minimum fungisidal konsantrasyonlarını belirlemek için optimum test koşulları: NCCLS işbirlikçi çalışması. J Clin Microbiol. 2002; 40 :3776–3781. doi: 10.1128/JCM.40.10.3776-3781.2002. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Favero D, Furlaneto-Maia L, França EJ, Góes HP, Furlaneto MC. Candida türlerinin klinik izolatlarının hemolitik faktör üretimi . Curr Microbiol. 2014; 68 :161–166. doi: 10.1007/s00284-013-0459-6. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Gautam N, Mantha AK, Mittal S (2014) Antikanser ajanlar olarak uçucu yağlar ve bileşenleri: mekanik bir bakış. Biomed Res Int 2014. 10.1155/2014/154106 [ PMC ücretsiz makale ] [ PubMed ]
              • Gow NA, Kahverengi AJ, Odds FC. Mantar morfogenezi ve konak istilası. Curr Opin Microbiol. 2002; 5 :366–371. doi: 10.1016/S1369-5274(02)00338-7. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Gruenwald J, Freder J, Armbruester N. Tarçın ve sağlık. Crit Rev Food Sci Nutr. 2010; 50 :822–834. doi: 10.1080/10408390902773052. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • He M, Du M, Fan M, Bian Z (2007) Öjenolün Candida albicans biyofilmlerine karşı in vitro aktivitesi . Mycopathologia 163:137–143. 10.1007/s11046-007-0097-2 [ PubMed ]
              • Khan MSA, Ahmad I. Uçucu yağların antifungal aktivitesi ve ilaca dirençli Aspergillus fumigatus ve Trichophyton rubrum suşlarına karşı flukonazol ile sinerjisi . Appl Microbiol Biotechnol. 2011; 90 :1083–1094. doi: 10.1007/s00253-011-3152-3. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Khan MSA, Ahmad I. Cinnamomum verum , Cymbopogon citratus , Cymbopogon martini ve Syzygium aromaticum esansiyel yağları tarafından albicans olmayan Candida'nın azol dirençli suşlarında büyüme ve virülans faktörlerinin in vitro inhibisyonu . J Biol Yasası Üretim Uy. 2013; 3 :139–153. doi: 10.1080/22311866.2013.817729. [ CrossRef ] [ Google Akademik ]
              • Khan MSA, Ahmed I, Cameotra SS. Fenil aldehit ve propanoidler, Candida albicans'ta ergosterol'ü hedef alan hücre zarına ve hücre duvarına yönelik çok sayıda etki alanı gösterir . AMB Ekspres. 2013; 3:54 . doi: 10.1186/2191-0855-3-54. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Knobloch K, Pauli A, Iberl B, Weigand H, Weis N. Uçucu yağ bileşenlerinin antibakteriyel ve antifungal özellikleri. J Essent Oil Res. 1989; 1 :119–128. doi: 10.1080/10412905.1989.9697767. [ CrossRef ] [ Google Akademik ]
              • Larkin E, Hager C, Chandra J, Mukherjee PK, Retuerto M, Salem I, Long L, Isham N, Kovanda L, Borroto-Esoda K, Wring S. Ortaya çıkan patojen Candida auris : büyüme fenotipi, virülans faktörleri, antifungallerin aktivitesi ve yeni bir glukan sentezi inhibitörü olan SCY-078'in büyüme morfolojisi ve biyofilm oluşumu üzerindeki etkisi. Antimikrob Ajanlar Chemother. 2017; 6 :e02396–e02416. doi: 10.1128/AAC.02396-16. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Leite MCA, Bezerra APDB, Sousa JPD, Guerra FQS, Lima EDO (2014) Citralin Candida albicans'a karşı antifungal aktivite ve etki mekanizmasının değerlendirilmesi . Kanıta Dayalı Tamamlayıcı Altern Med 2014. 10.1155/2014/378280 [ PMC ücretsiz makale ] [ PubMed ]
              • Li WR, Shi QS, Liang Q, Huang XM, Chen YB. Antifungal etki ve sarımsak yağının Penicillium funiculosum üzerindeki mekanizması . Appl Microbiol Biotechnol. 2014; 98 :8337–8346. doi: 10.1007/s00253-014-5919-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Lo HJ, Köhler JR, DiDomenico B, Loebenberg D, Cacciapuoti A, Fink GR. İpliksiz C. albicans mutantları avirulenttir. Hücre. 1997; 90 :939–949. doi: 10.1016/S0092-8674(00)80358-X. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Lopes G, Pinto E, Andrade PB, Valentão P. Florotanninlerin dermatofitlere ve mayalara karşı antifungal aktivitesi: Candida albicans virülans faktörü üzerindeki etki ve etki mekanizmasına yaklaşımlar . PLoS Bir. 2013; 8 :e72203. doi: 10.1371/journal.pone.0072203. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Luo G, Samaranayake LP, Yau JY. Candida türleri, diferansiyel in vitro hemolitik aktiviteler sergiler. J Clin Microbiol. 2001; 39 :2971–2974. doi: 10.1128/JCM.39.8.2971-2974.2001. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Malçok HK, Aktaş E, Ayyıldız A, Yiğit N, Yazgi H (2009) Candida türlerinin sıvı ortamda hemolitik aktiviteleri. Eurasian J Med 41(2):95–98 [ PMC ücretsiz makale ] [ PubMed ]
              • Manns JM, Mosser DM, Buckley İK. Candida albicans tarafından bir hemolitik faktör üretimi . Bağışıklık bulaştırın. 1994; 62 :5154–5156. doi: 10.1128/IAI.62.11.5154-5156.1994. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Mayaud L, Carricajo A, Zhiri A, Aubert G. 13 esansiyel yağın bakteriyostatik ve bakterisidal aktivitesinin antibiyotiklere karşı değişen hassasiyete sahip suşlara karşı karşılaştırılması. Lett Appl Microbiol. 2008; 47 :167–173. doi: 10.1111/j.1472-765X.2008.02406.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Nayak AP, Yeşil BJ, Beezhold DH. Mantar hemolizinleri. Med Mycol. 2013; 51 :1–16. doi: 10.3109/13693786.2012.698025. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Prasad KN, Yang B, Dong X, Jiang G, Zhang H, Xie H, Jiang Y. Cinnamomum türlerinden flavonoid içerikleri ve antioksidan aktiviteleri . Innov Food Sci Emerg Technol. 2009; 10 :627–632. doi: 10.1016/j.ifset.2009.05.009. [ CrossRef ] [ Google Akademik ]
              • Ranasinghe L, Jayawardena B, Abeywickrama K. Cinnamomum zeylanicum (L.) ve Syzygium aromaticum (L.) Merr ve LM Perry'nin esansiyel yağlarının muzdan izole edilen taç çürümesi ve antraknoz patojenlerine karşı mantar öldürücü aktivitesi. Lett Appl Microbiol. 2002; 35 :208–211. doi: 10.1046/j.1472-765X.2002.01165.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Raut JS, Karuppayil SM. Uçucu yağların tıbbi özellikleri hakkında bir durum incelemesi. End. Mahsul Üretimi 2014; 62 :250–264. doi: 10.1016/j.indcrop.2014.05.055. [ CrossRef ] [ Google Akademik ]
              • Sanla-Ead N, Jangchud A, Chonhenchob V, Suppakul P. Sinnamaldehit ve öjenolün antimikrobiyal aktivitesi ve selüloz bazlı ambalaj filmlerine dahil edildikten sonraki aktiviteleri. Packag Technol Sci. 2012; 25 :7–17. doi: 10.1002/pts.952. [ CrossRef ] [ Google Akademik ]
              • Sardi JCO, Silva DR, Mendes-Giannini MJS, Rosalen PL. Candida auris : epidemiyoloji, risk faktörleri, virülans, direnç ve terapötik seçenekler. Mikrob Patog. 2018; 125 :116–121. doi: 10.1016/j.micpath.2018.09.014. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Sardi JCO, Scorzoni L, Bernardi T, Fusco-Almeida A, Giannini MM. Candida türleri: mevcut epidemiyoloji, patojenite, biyofilm oluşumu, doğal antifungal ürünler ve yeni terapötik seçenekler. J Med Microbiol. 2013; 62 :10–24. doi: 10.1099/jmm.0.045054-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Sears D, Schwartz BS. Candida auris : gelişmekte olan çoklu ilaca dirençli bir patojen. Uluslararası J Infect Dis. 2017; 63 :95–98. doi: 10.1016/j.ijid.2017.08.017. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Shahina Z, El-Ganiny AM, Minion J, Whiteway M, Sultana T, Dahms TE (2018) Cinnamomum zeylanicum kabuğu esansiyel yağı, Candida albicans'ta hücre duvarı yeniden şekillenmesini ve iğ kusurlarını indükler . Fungal Biol Biotechnol 5:1–16. 10.1186/s40694-018-0046-5 [ Ücretsiz PMC makalesi ] [ PubMed ]
              • Thompson DS, Carlisle PL, Kadosh D. Candida türlerinde morfoloji ve virülansın birlikte evrimi. Ökaryot Hücresi. 2011; 10 :1173–1182. doi: 10.1128/EC.05085-11. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Thosar N, Başak S, Bahadure RN, Rajurkar M (2013) Beş esansiyel yağın oral patojenlere karşı antimikrobiyal etkinliği: in vitro bir çalışma. Eur J Dent 7(Ek 1):S71. https://doi.org/1305-7456.119078/1305-7456.119078 [ Ücretsiz PMC makalesi ] [ PubMed ]
              • Topa SH, Subramoni S, Palombo EA, Kingshott P, Rice SA, Blackall LL. Cinnamaldehit, Pseudomonas aeruginosa'nın biyofilm oluşumunu ve sürü hareketliliğini bozar . Mikrobiyoloji. 2018; 164 :1087–1097. doi: 10.1099/mic.0.000692. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Tworkoski T. Uçucu yağların herbisit etkileri. Ot Bilimi 2002; 50 :425–431. doi: 10.1614/0043-1745(2002)050[0425:HEOEO]2.0.CO;2. [ CrossRef ] [ Google Akademik ]
              • Vaseeharan B, Thaya R. İmmün uyarıcılar olarak şifalı bitki türevleri: su ürünleri yetiştiriciliğinde kemoterapötiklere ve antibiyotiklere bir alternatif. Aquac Uluslararası 2014; 22 :1079–1091. doi: 10.1007/s10499-013-9729-3. [ CrossRef ] [ Google Akademik ]
              • Velluti A, Sanchis V, Ramos A, Egido J, Marın S. Tarçın, karanfil, limon otu, kekik ve palmaroz esansiyel yağlarının mısır tanesinde Fusarium proliferatum tarafından büyüme ve fumonisin B1 üretimi üzerindeki inhibitör etkisi. Int J Gıda Mikrobiyolü. 2003; 89 :145–154. doi: 10.1016/S0168-1605(03)00116-8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Velluti A, Sanchis V, Ramos A, Turon C, Marin S. Uçucu yağların, mısır tanesinde farklı sıcaklık ve su aktivitesi koşullarında Fusarium graminearum tarafından büyüme hızı, zearalenon ve deoksinivalenol üretimi üzerindeki etkisi. J Appl Microbiol. 2004; 96 :716–724. doi: 10.1111/j.1365-2672.2004.02212.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Wan L, Luo G, Lu H, Xuan D, Cao H, Zhang J. Ortak elektrolitler tarafından Candida türlerinin hemolitik aktivitesindeki değişiklikler . BMC Mikrobiyoloji. 2015; 15 :171. doi: 10.1186/s12866-015-0504-7. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Yunes RA, Cechinel Filho V, Ferreira J, Calixto JB. Doğal ürünlerin yeni analjezik ilaç kaynağı olarak kullanılması. Stud Nat Prod Chem. 2005; 30 :191–212. doi: 10.1016/S1572-5995(05)80033-X. [ CrossRef ] [ Google Akademik ]
              • Zeng H, Chen X, Liang J. Dermatofit türleri üzerinde rezeneden ( Foeniculum vulgare L.) elde edilen esansiyel yağın in vitro antifungal aktivitesi ve mekanizması . J Med Microbiol. 2015; 64 :93–103. doi: 10.1099/jmm.0.077768-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]

              Yorum yap


              • #8
                Cinnamomum verum J. Presl Kabuğu Yüksek İçerikte Nikotinamid Mononükleotidi İçerir

                Jing Yan 1, takumi sakamoto 1 2, arif islam 1 2, Yashuang Ping 1, Soho Oyama 1, Hiroyuki Fuchino 3, Hitomi Kawakami 3, Kayo Yoshimatsu 3, Tomoaki Kahyo 1 4, Mitsutoshi Setou 1 4 5
                üyelikler çöküş üyelikler

                • 1Hücresel ve Moleküler Anatomi Bölümü, Hamamatsu Üniversitesi Tıp Fakültesi, Hamamatsu 431-3192, Shizuoka, Japonya.
                • 2Preppers Co., Ltd., 141 Innovative Medical Collaboration Building, 1-20-1 Handayama, Higashi-ku, Hamamatsu 431-3192, Shizuoka, Japonya.
                • 3Tsukuba Bölümü, Tıbbi Bitki Kaynakları Araştırma Merkezi, Ulusal Biyomedikal Yenilik, Sağlık ve Beslenme Enstitüleri (NIBIOHN), 1-2 Hachimandai, Tsukuba 305-0843, Ibaraki, Japonya.
                • 4Uluslararası Kitle Görüntüleme Merkezi, Hamamatsu Üniversitesi Tıp Fakültesi, 1-20-1 Handayama, Higashi-ku, Hamamatsu 431-3192, Shizuoka, Japonya.
                • 5Sistemler Bölümü Moleküler Anatomi, Tıbbi Fotonik Araştırma Enstitüsü, Üstün Tıbbi Fotonik, Eğitim ve Araştırma Merkezi, 1-20-1 Handayama, Higashi-ku, Hamamatsu 431-3192, Shizuoka, Japonya.
                Ücretsiz PMC makalesi Soyut

                Küresel nüfus yaşlanıyor ve yaşlanmayı önleme ve yaşlanmaya bağlı hastalıkların önlenmesine yönelik müdahale stratejileri, günümüzde aktif olarak araştırılan bir konu haline geldi. Nikotinamid adenin dinükleotit (NAD + ) metabolik süreçte önemli bir moleküldür ve doku ve hücrelerdeki içeriği yaşla birlikte azalır. NAD + ' nın önemli bir ara maddesi ve öncüsü olan nikotinamid mononükleotidin (NMN) takviyesi, NAD + düzeylerini artırdı ve kemirgenlerde ve insan çalışmalarında güvenliği gösterildi. Bununla birlikte, doğal bitkilerdeki yüksek NMN içeriği, ilaç geliştirme için bitkisel ilaçlar olarak tam olarak araştırılmamıştır. Burada Cinnamomum verum J. Presl ( C. verum) yaprağının), ultra performanslı sıvı kromatografi-tandem kütle spektrometresi (UPLC-MS/MS) kullanılarak, gıda deneyimine sahip Bitki Özü Kitaplığı (PEL) arasında en yüksek NMN içeriğiydi. Bu sonucu doğrulamak için, taze C. verum'un kabuğu, yaprağı, kökü ve gövdesinin ekstraksiyonu ve kantitatif analizi yapılmıştır. Sonuçlar, kabuğun C. verum'da (0,471 mg/100 g) en yüksek NMN içeriğine sahip olduğunu ortaya koydu. Çalışmamız, yaşlanma karşıtı ve yaşlanmayla ilişkili hastalıkların önlenmesi için ilaçlar olarak NMN bağlamında doğal bitkiler geliştirme beklentilerine ışık tuttu. Gelecek, C. verum farmasötik formülasyonlarının geliştirilmesine ve uygulanmasına odaklanmalıdır .

                Anahtar Kelimeler: Cinnamomum verum J. Presl (C. verum); Bitki Özü Kitaplığı (PEL); UPLC-MS/MS; yaşlanma karşıtı; nikotinamid mononükleotidi (NMN); Geleneksel tıp.

                Yorum yap


                • #9
                  Her Türlü Kramp ve Mide Rahatsızlığı ve Alzheimer Hastalığı için Doğal Çözüm TARÇIN

                  Yorum yap

                  Hazırlanıyor...
                  X