Duyuru

Collapse
No announcement yet.

KUŞ ÜZÜMÜ Süperkritik Yağı

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • KUŞ ÜZÜMÜ Süperkritik Yağı

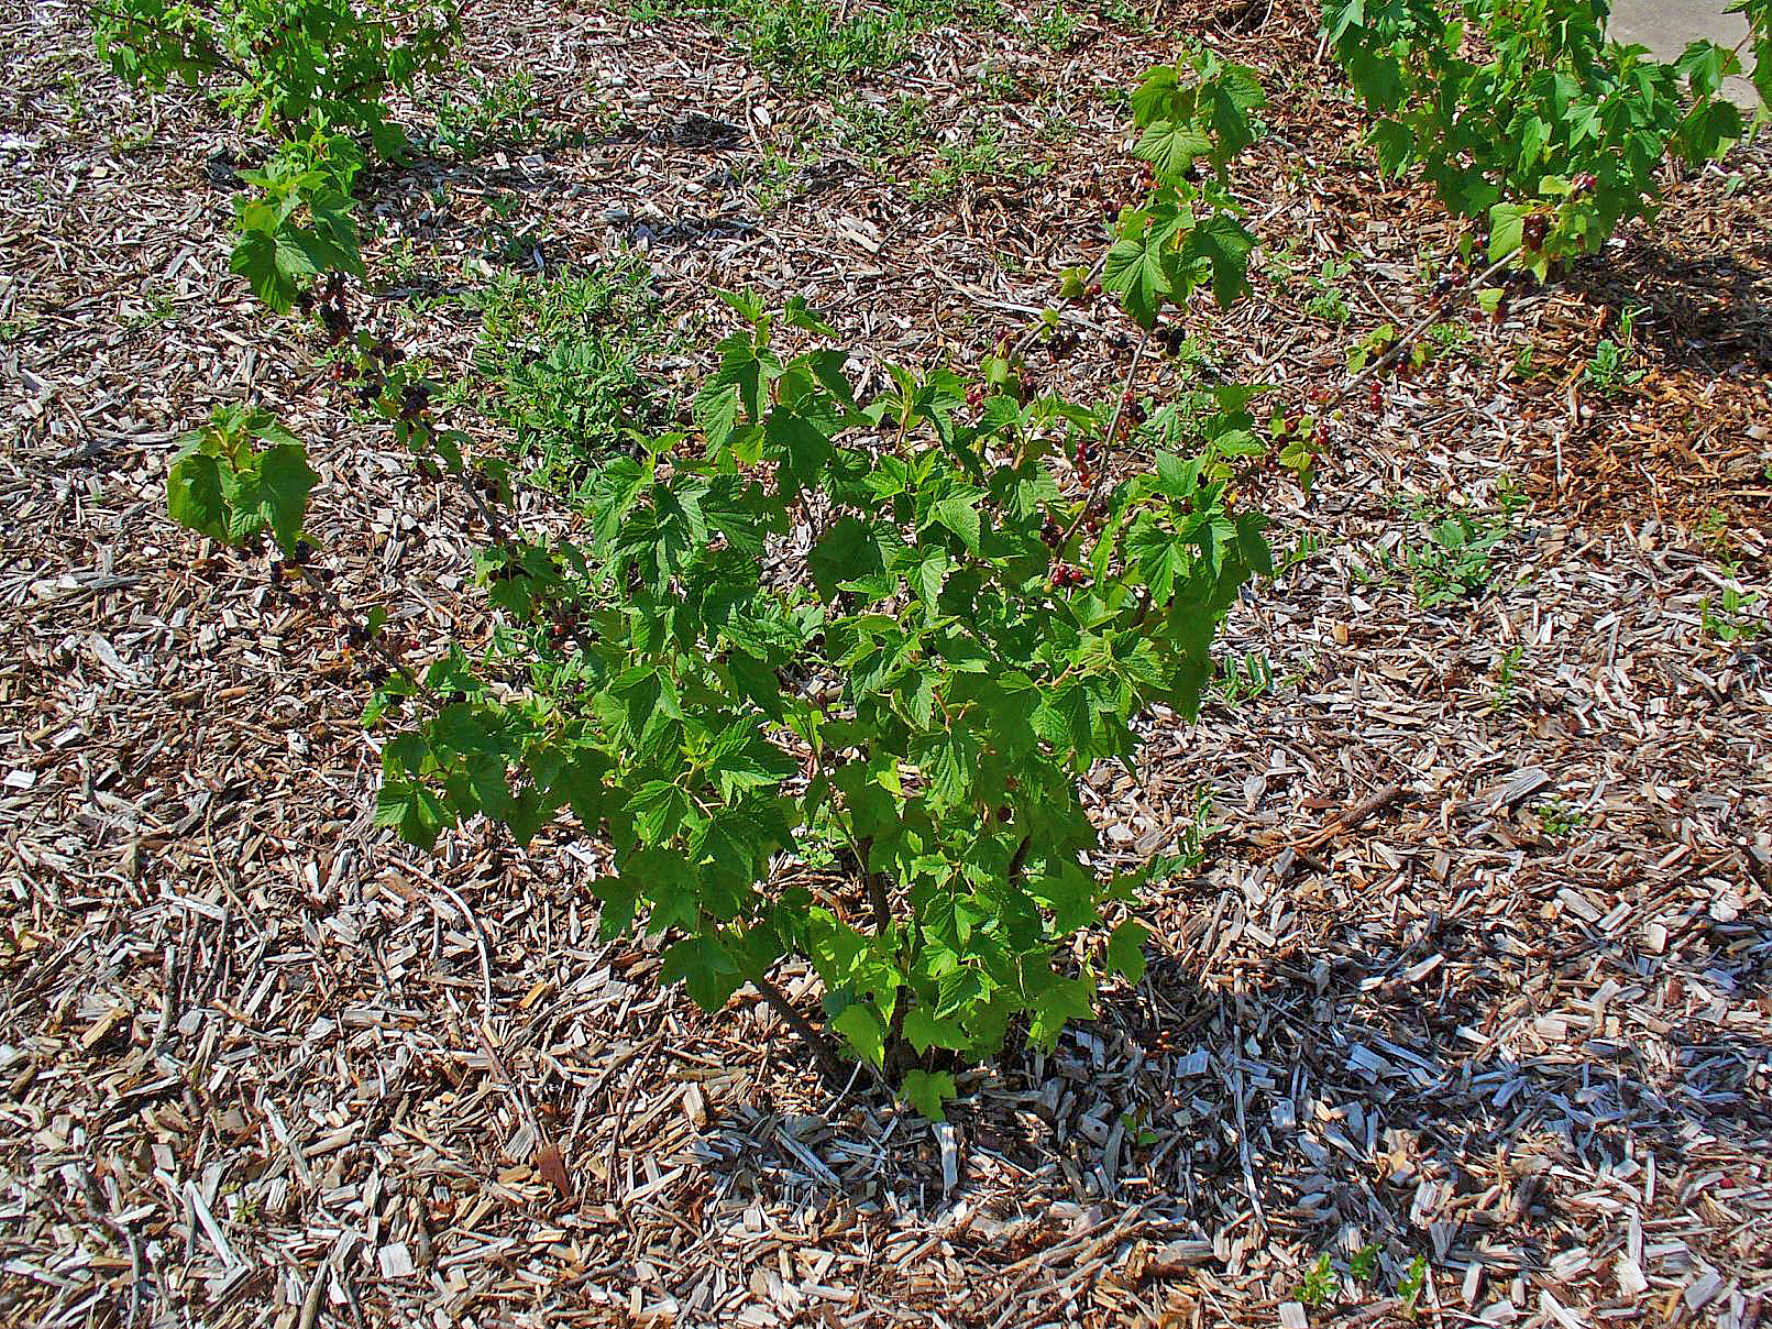
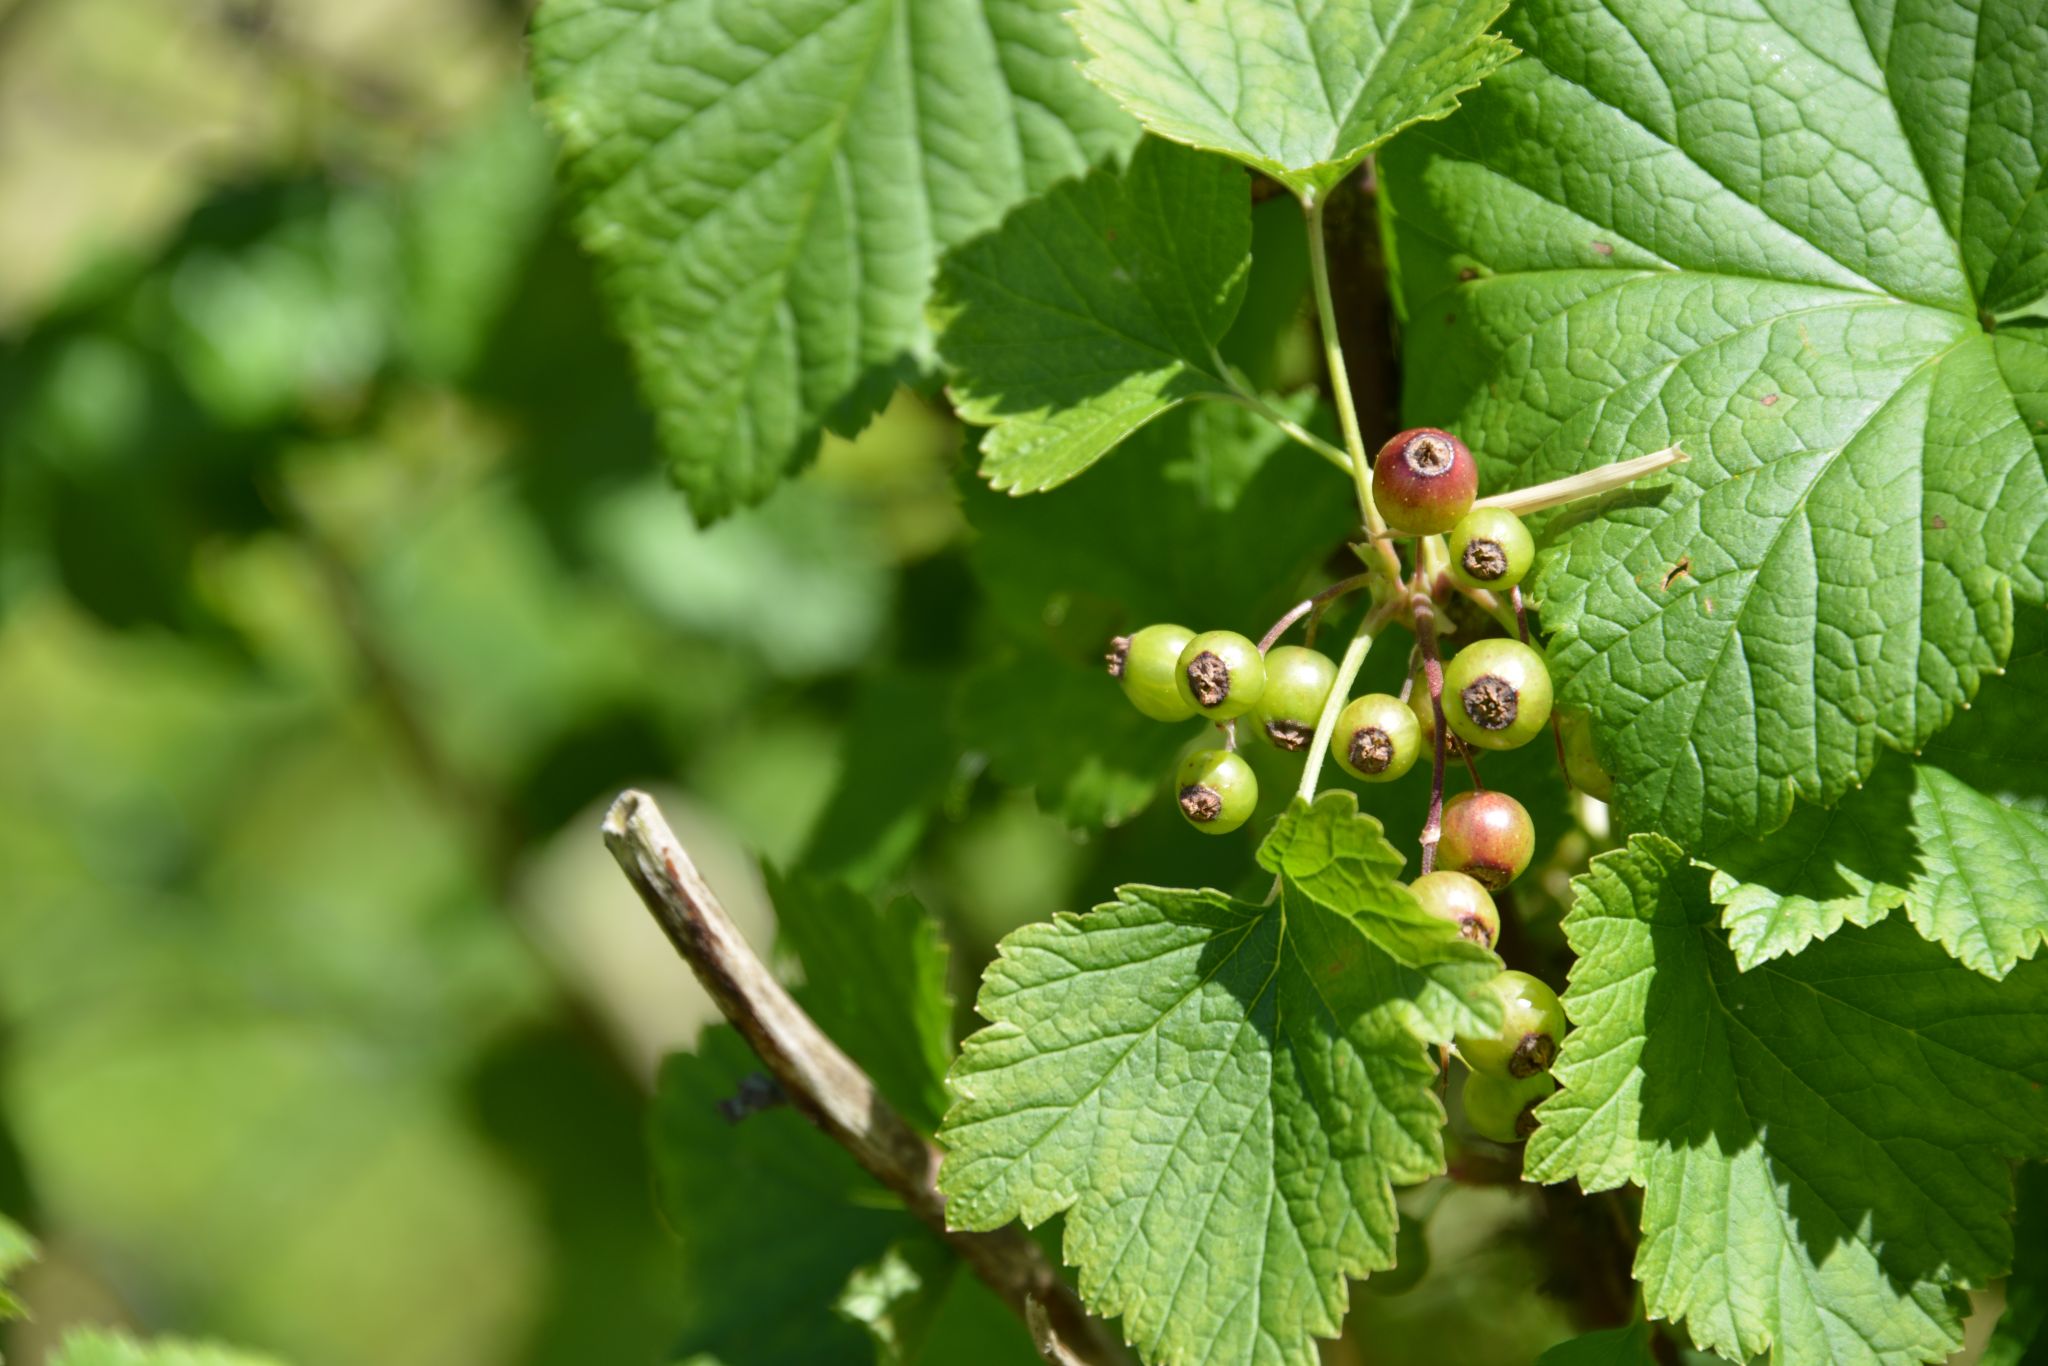
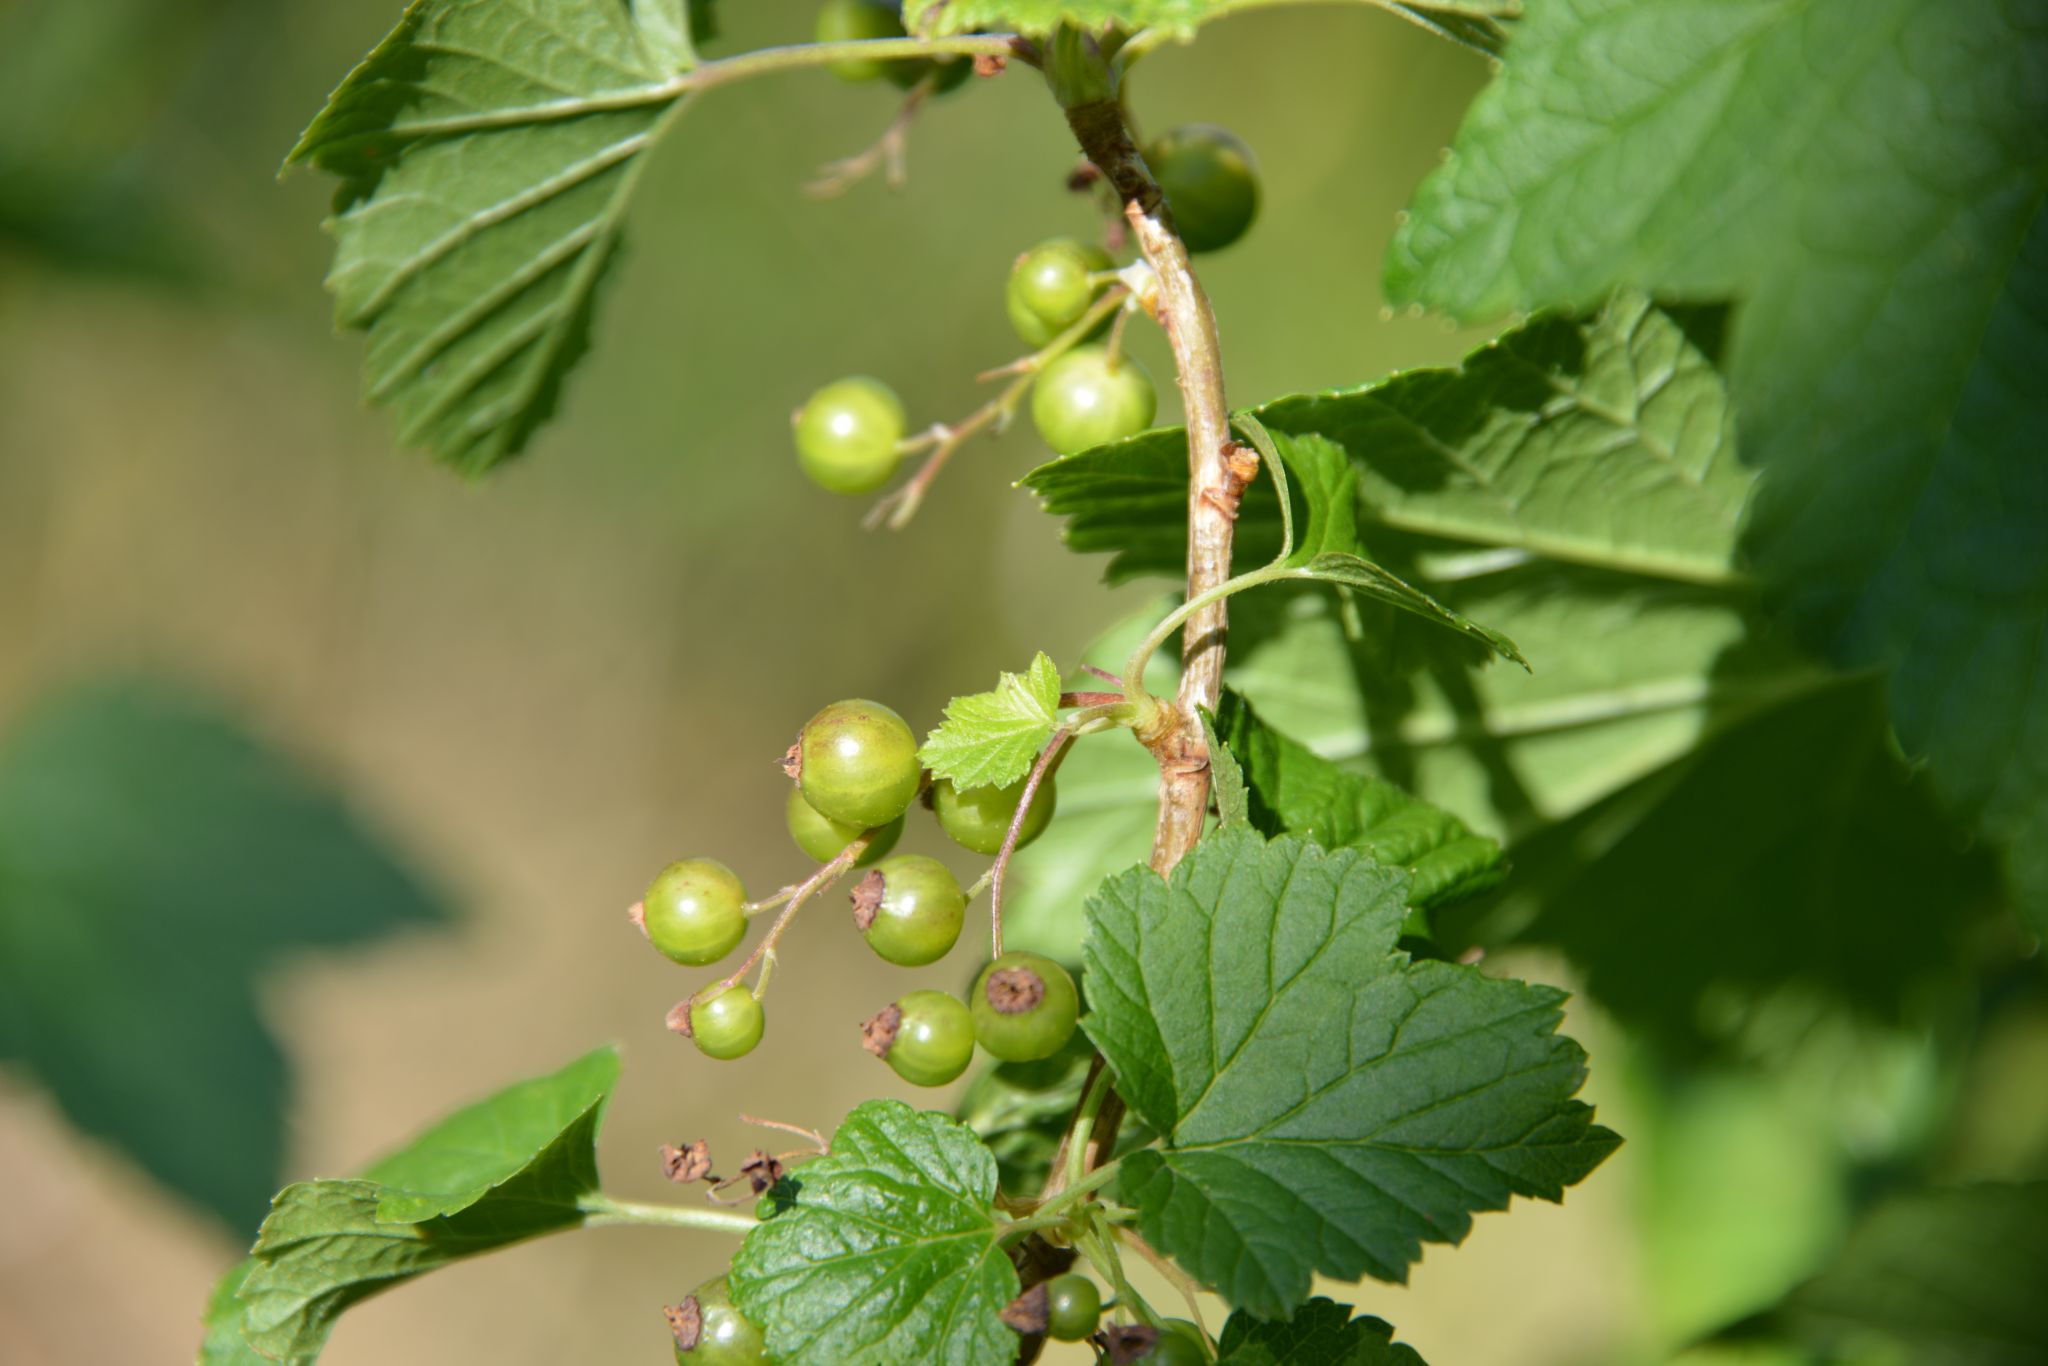
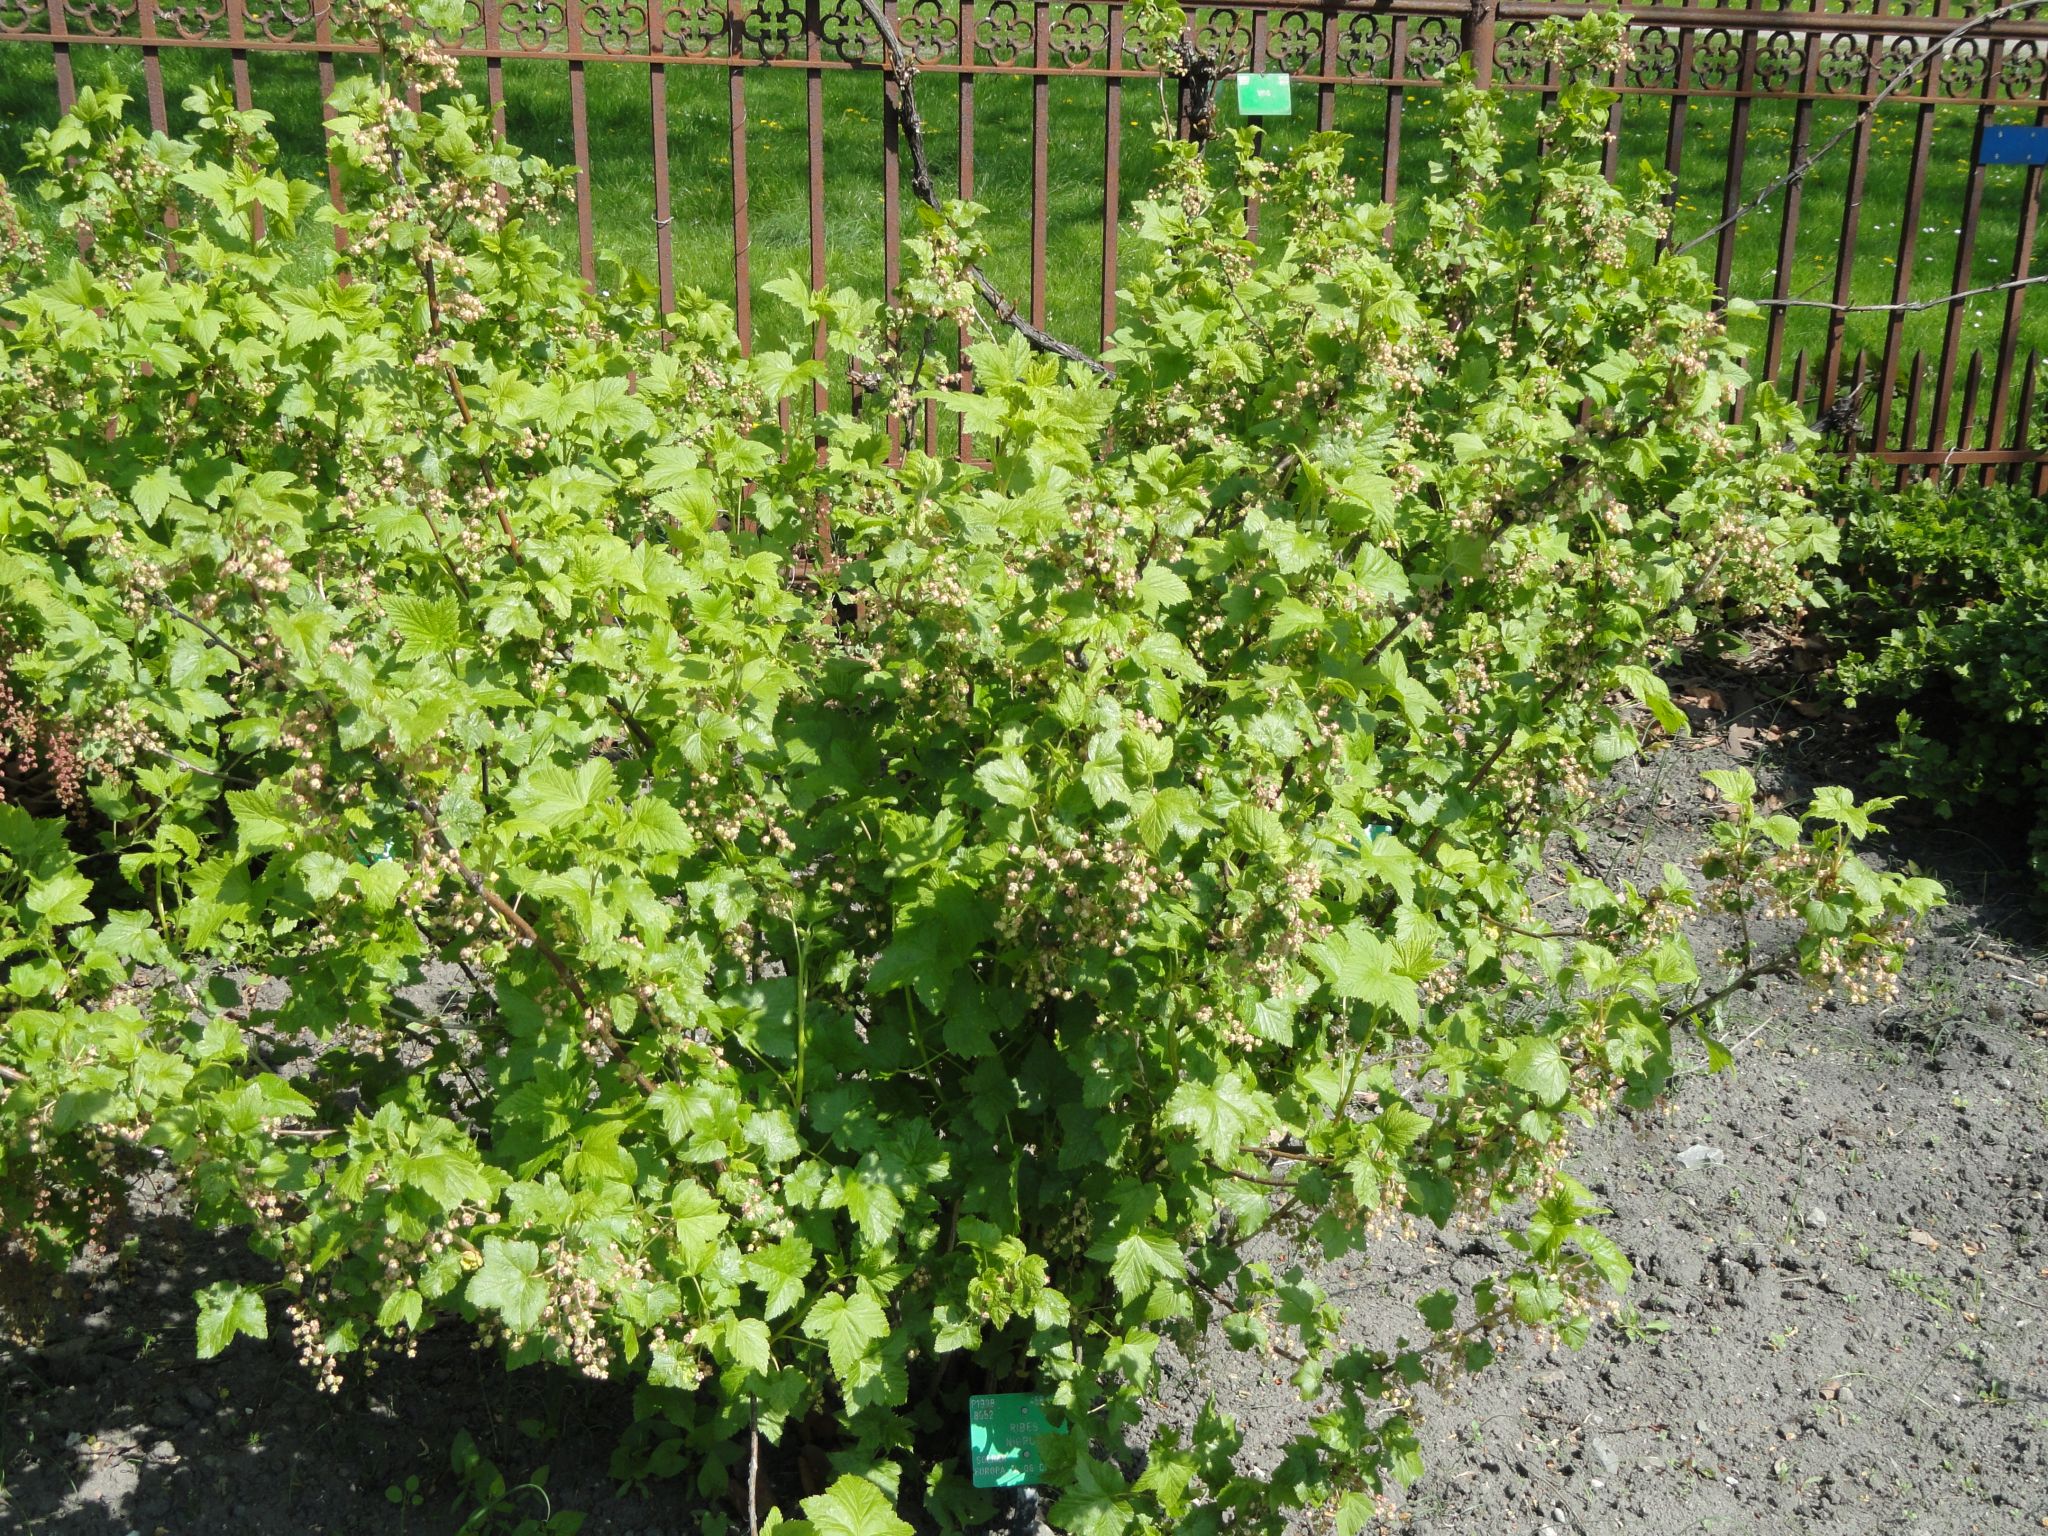
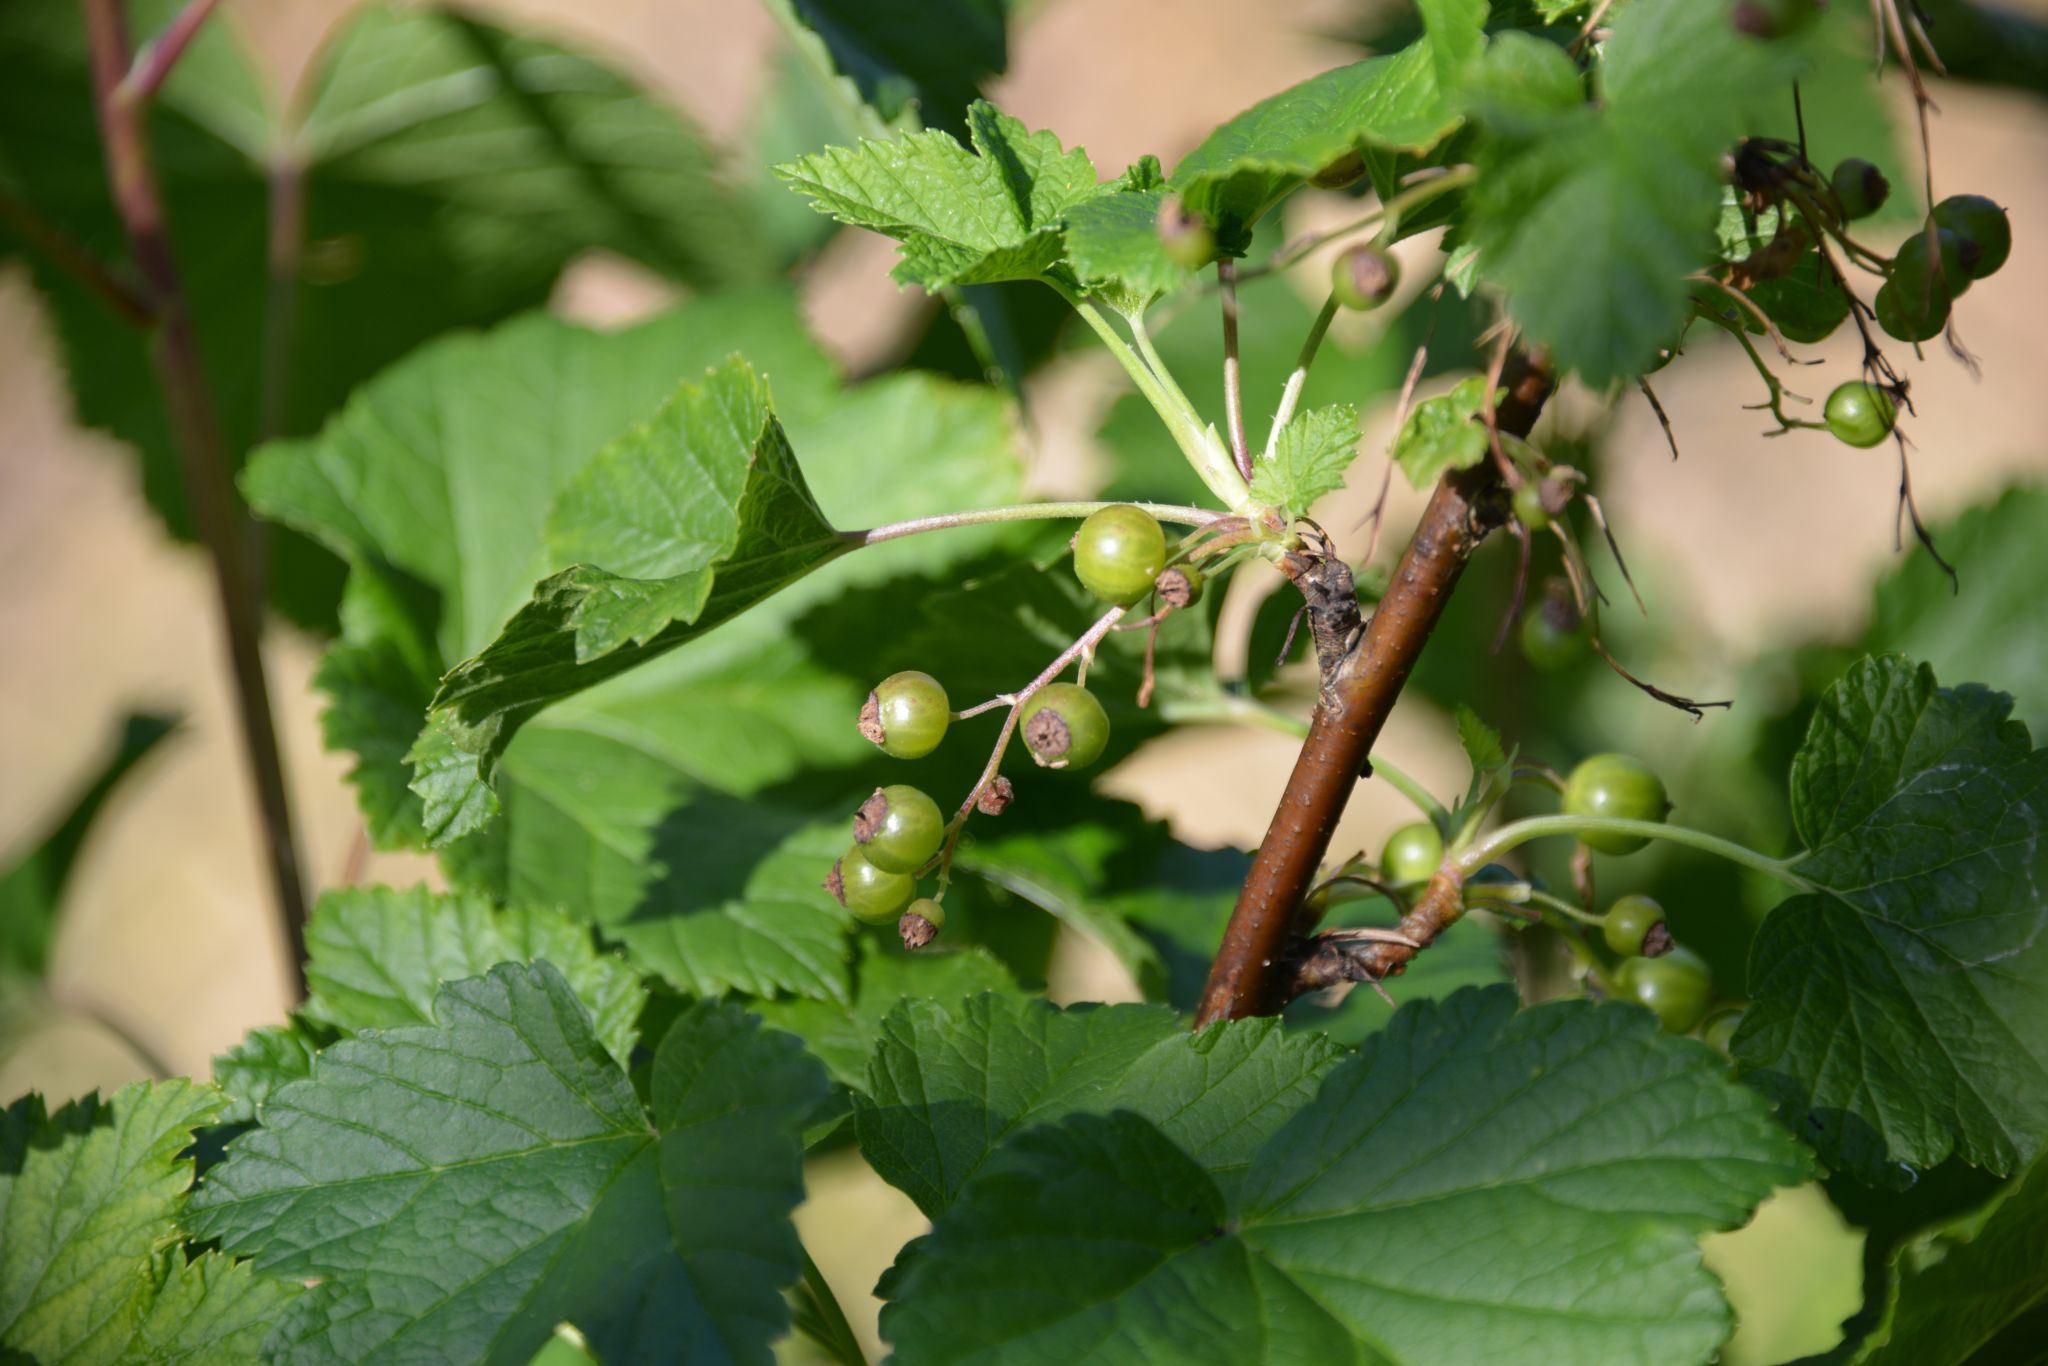
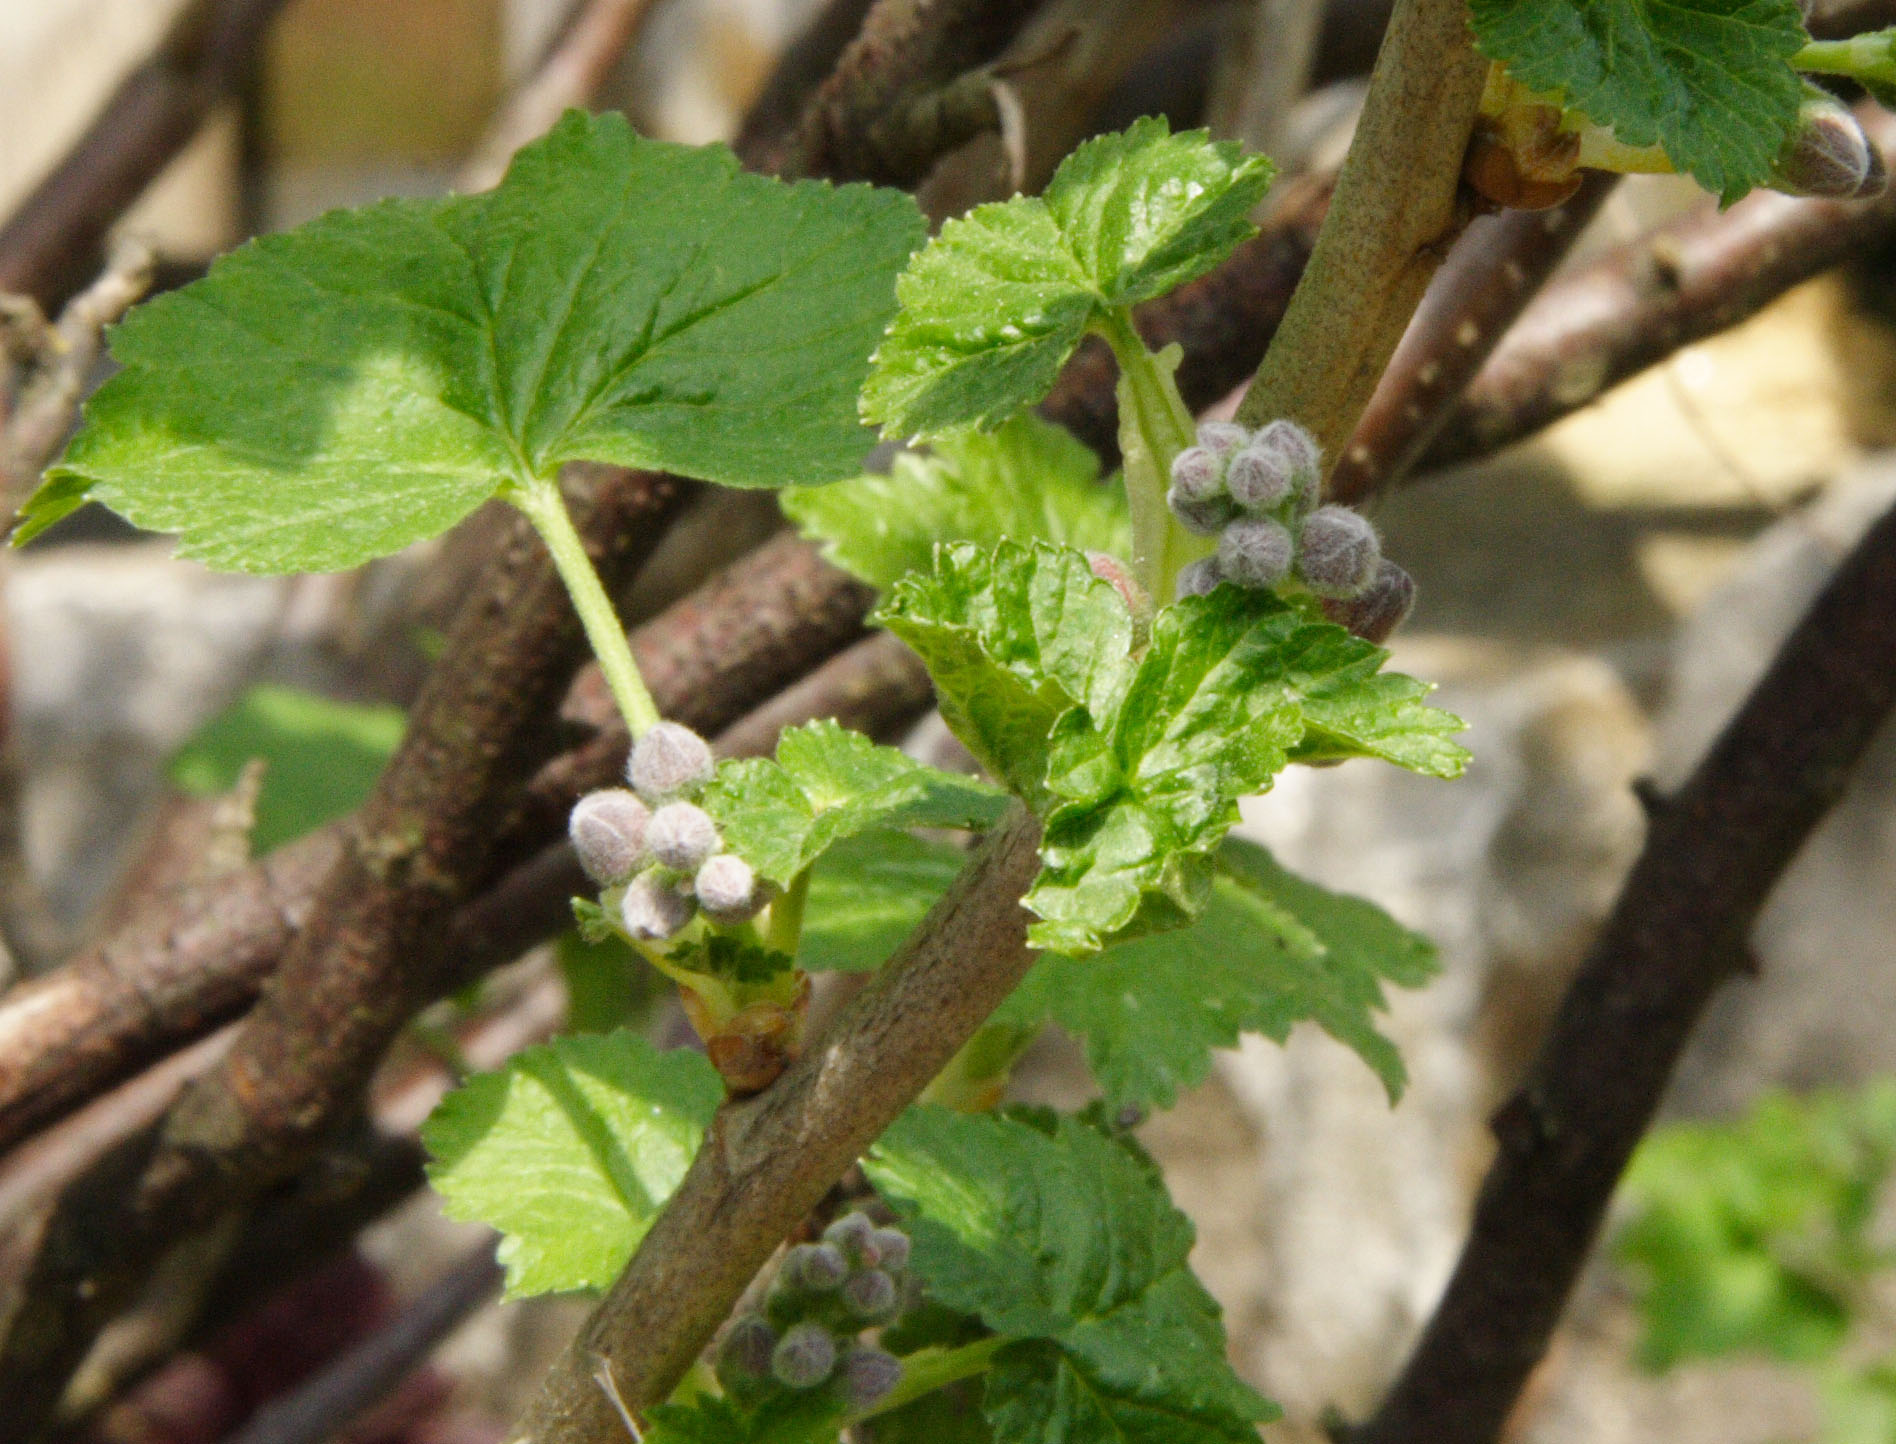
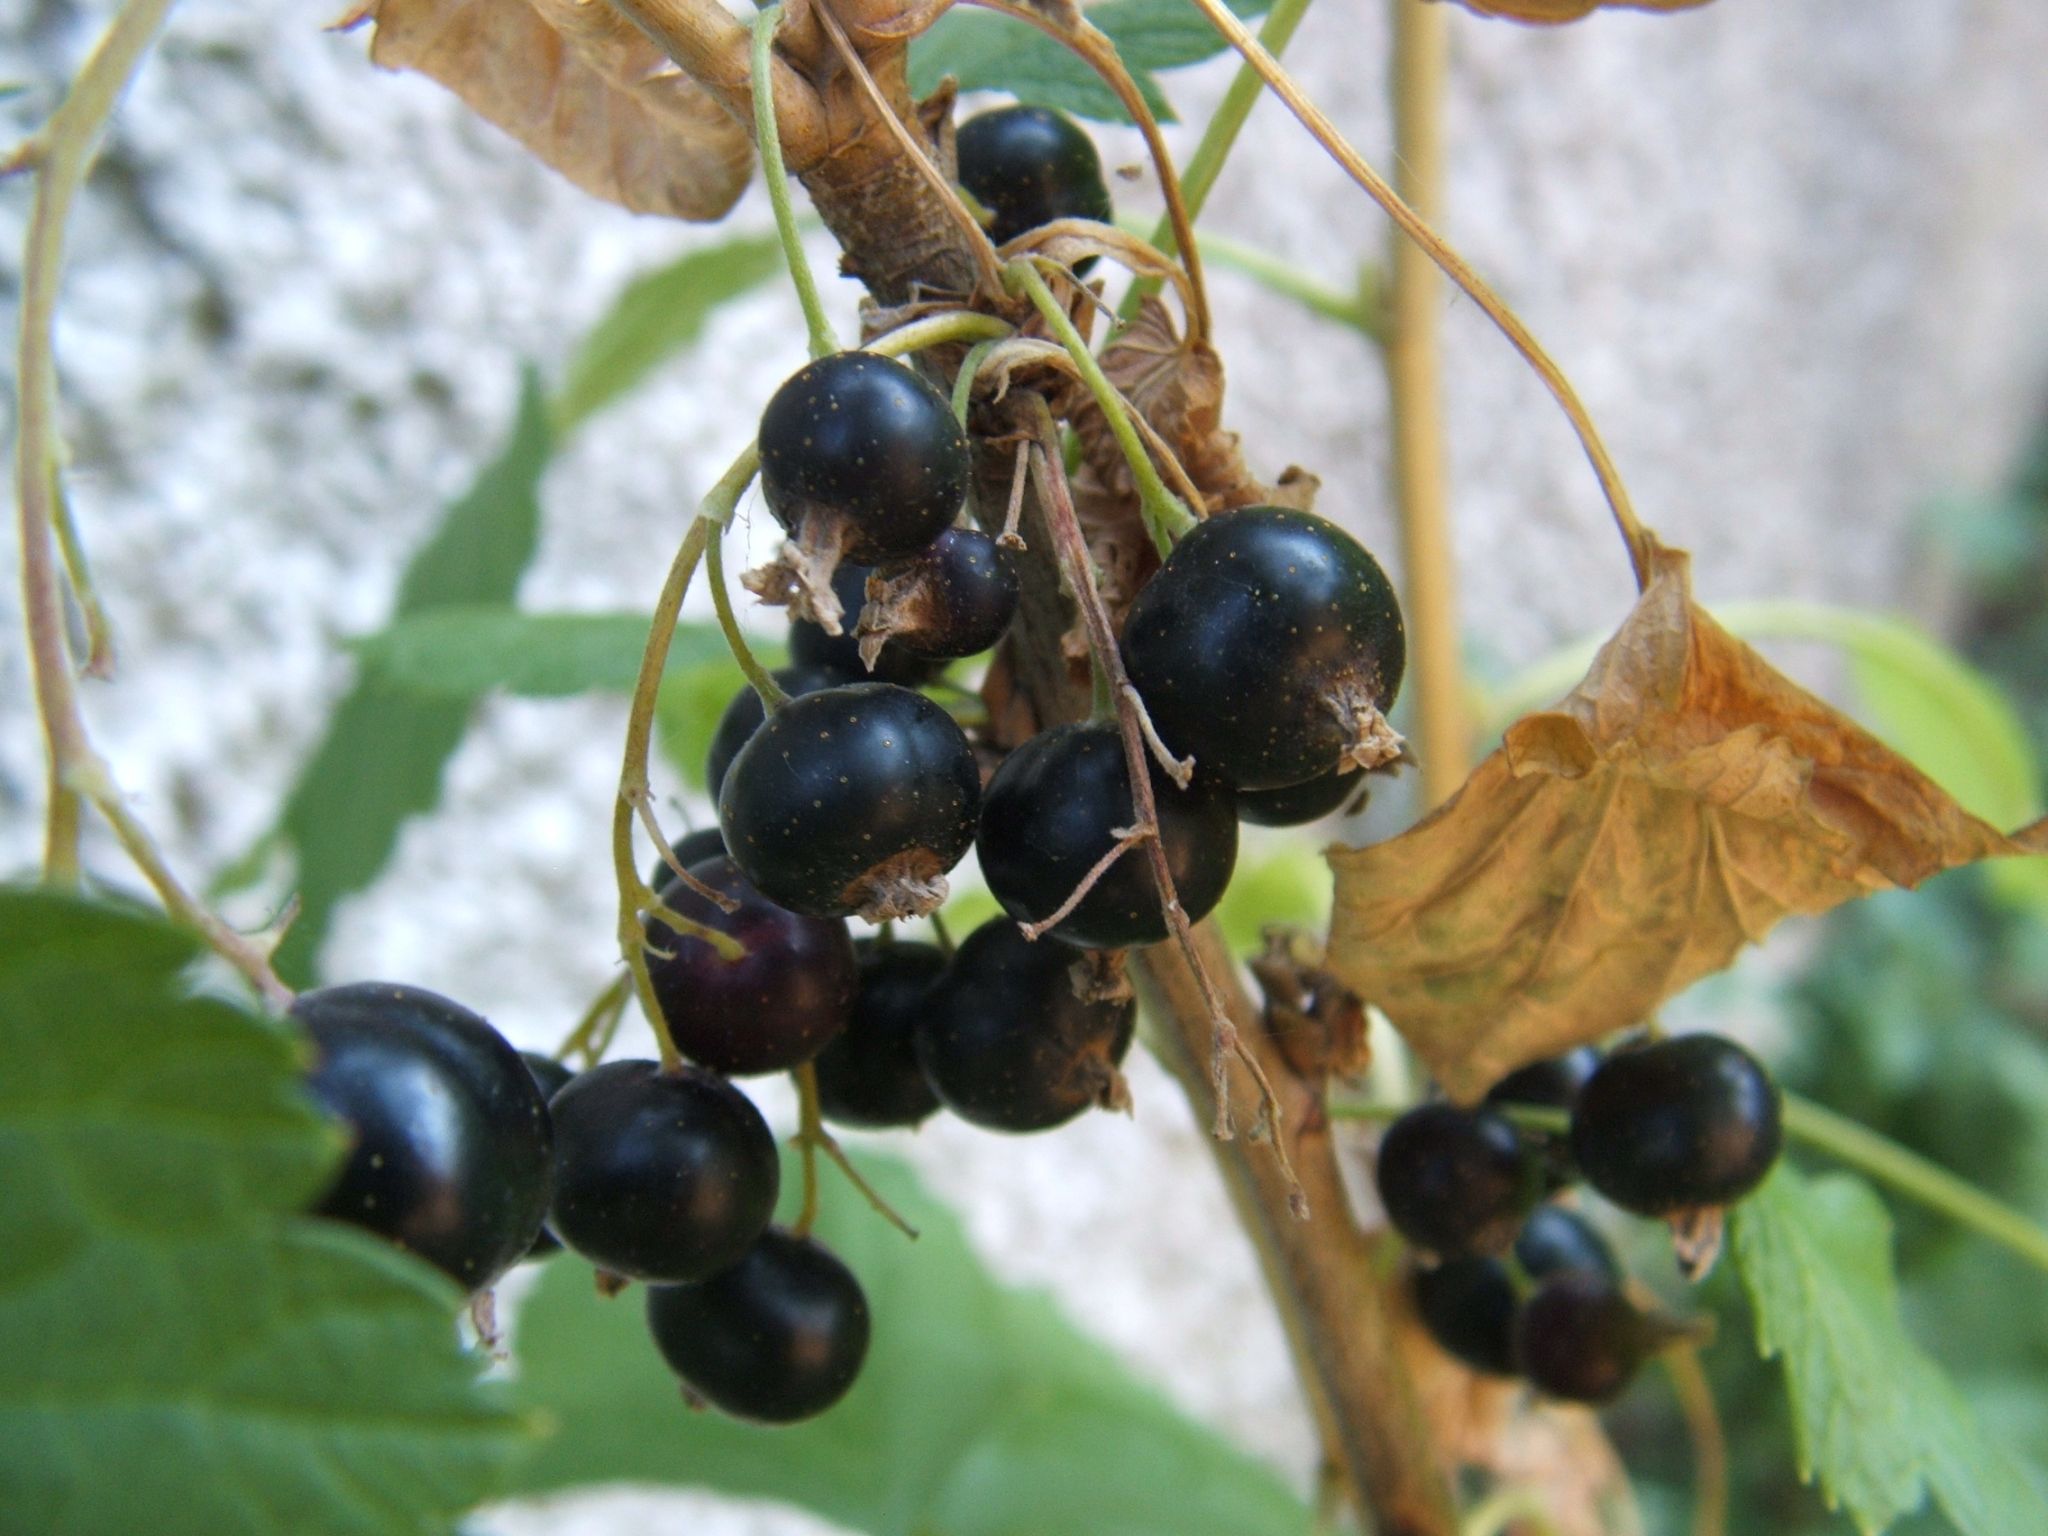
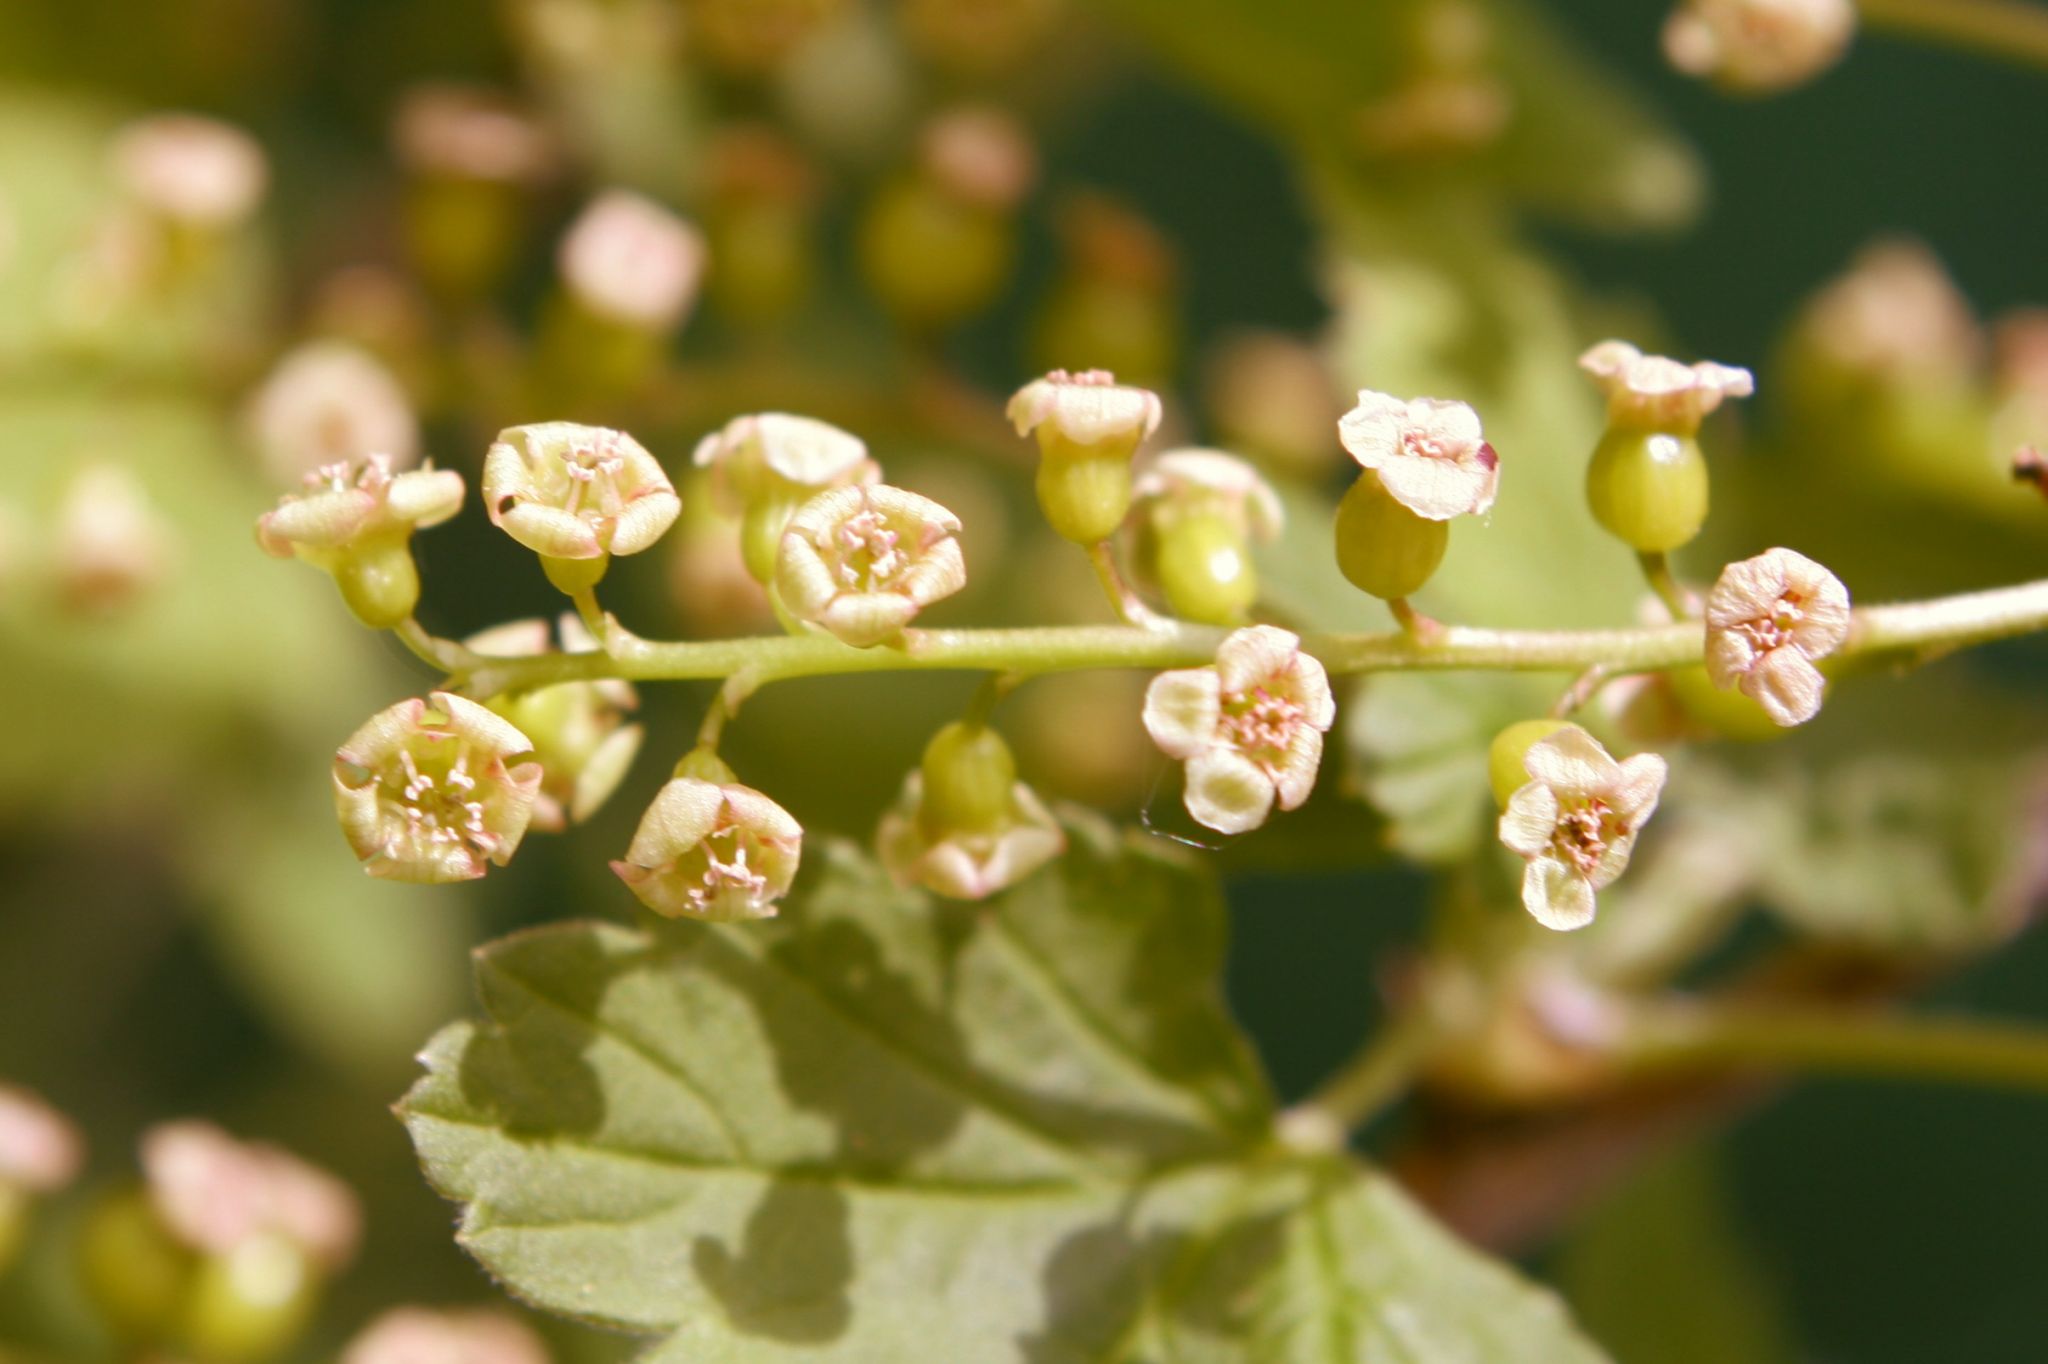
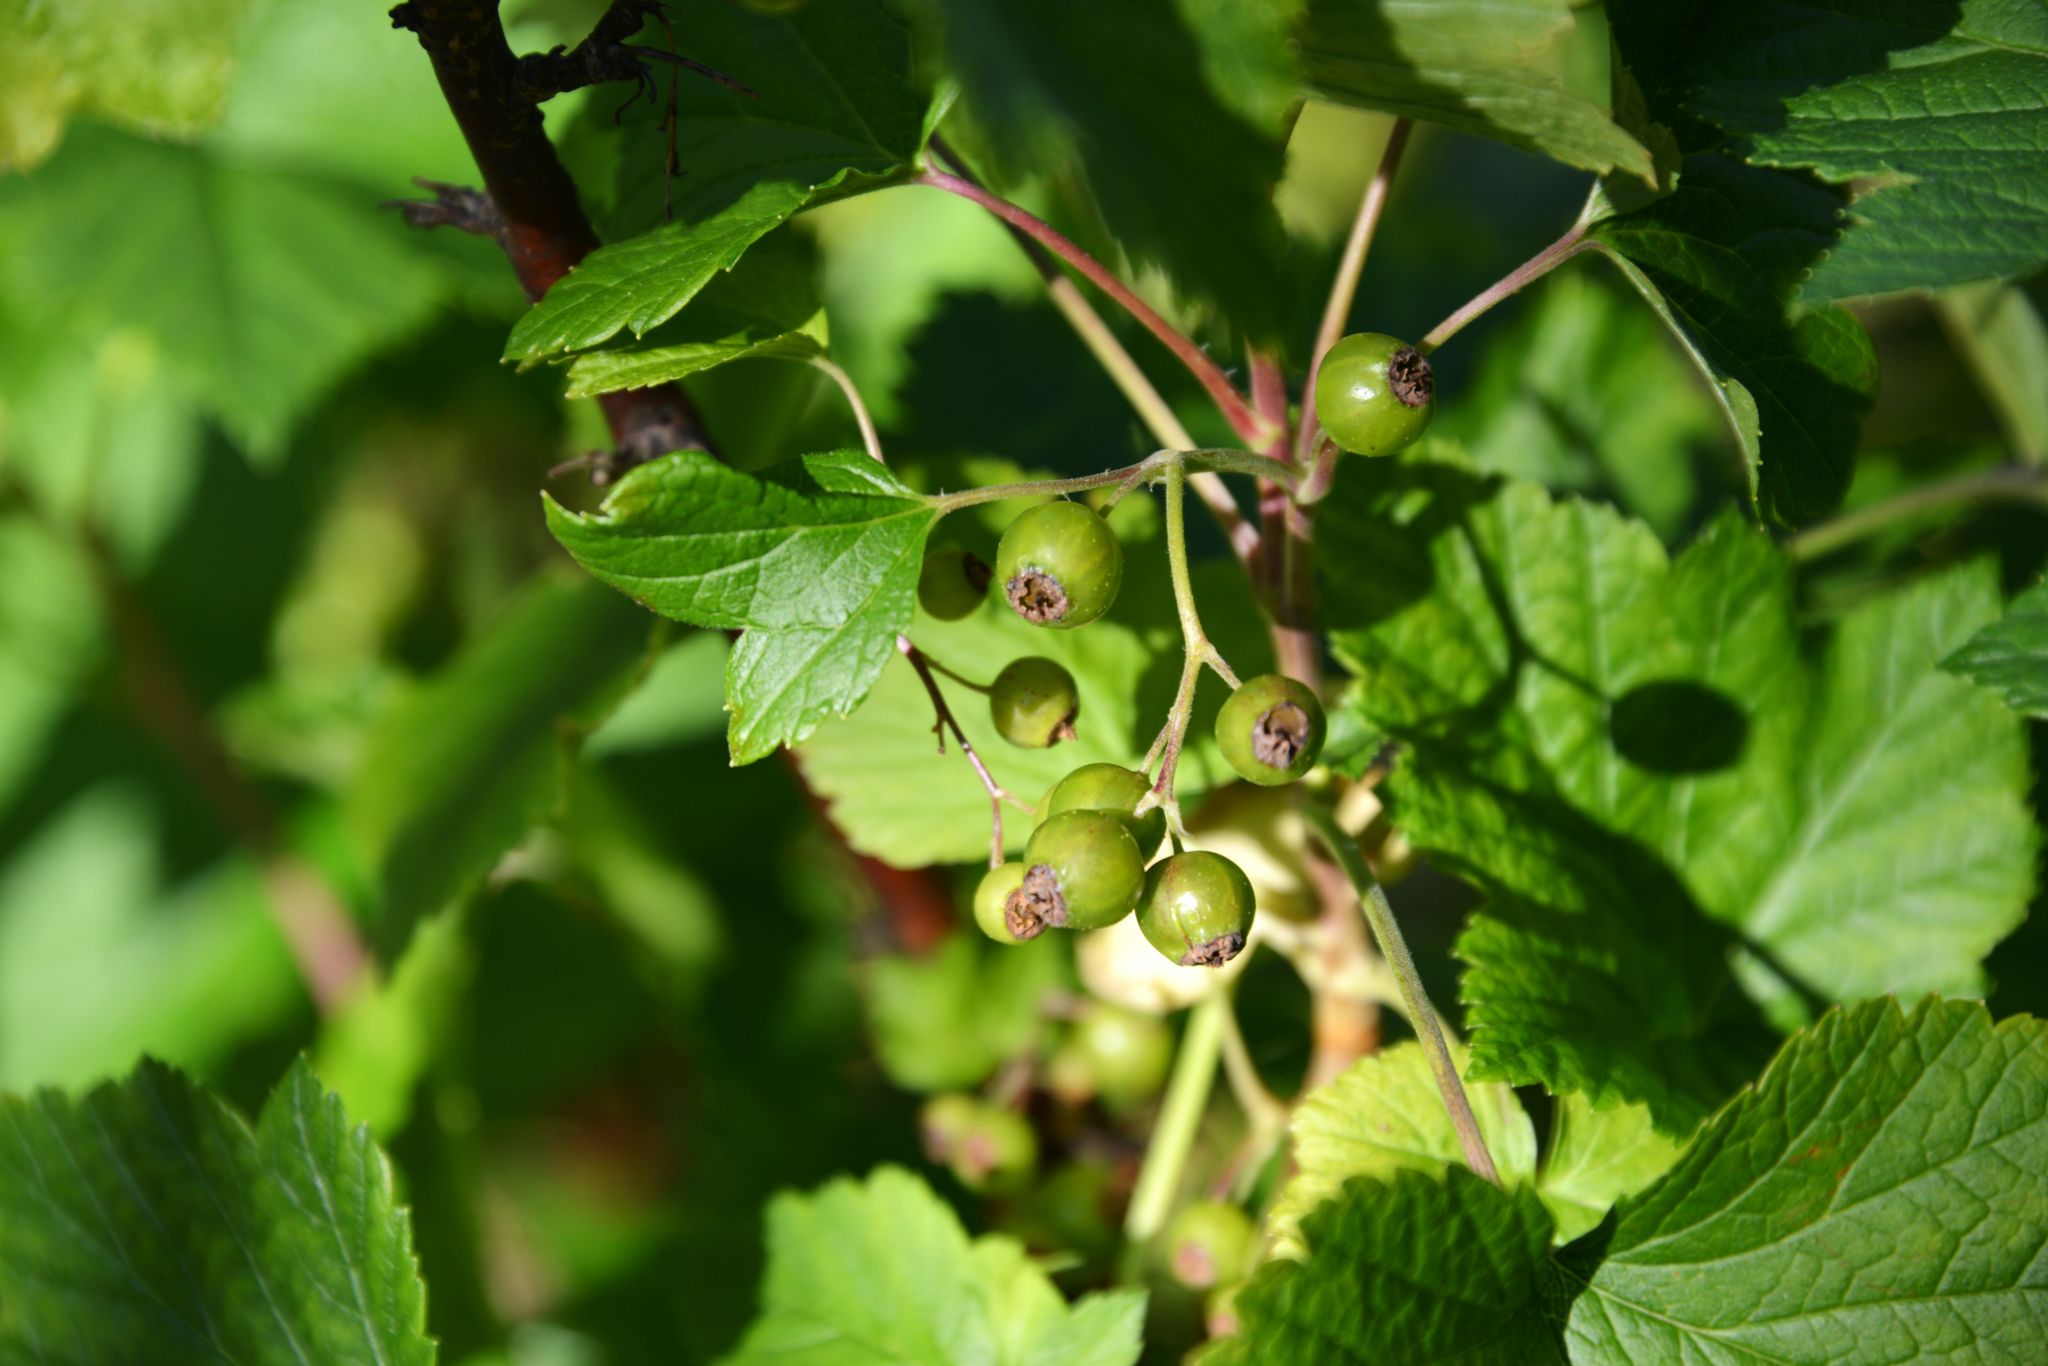
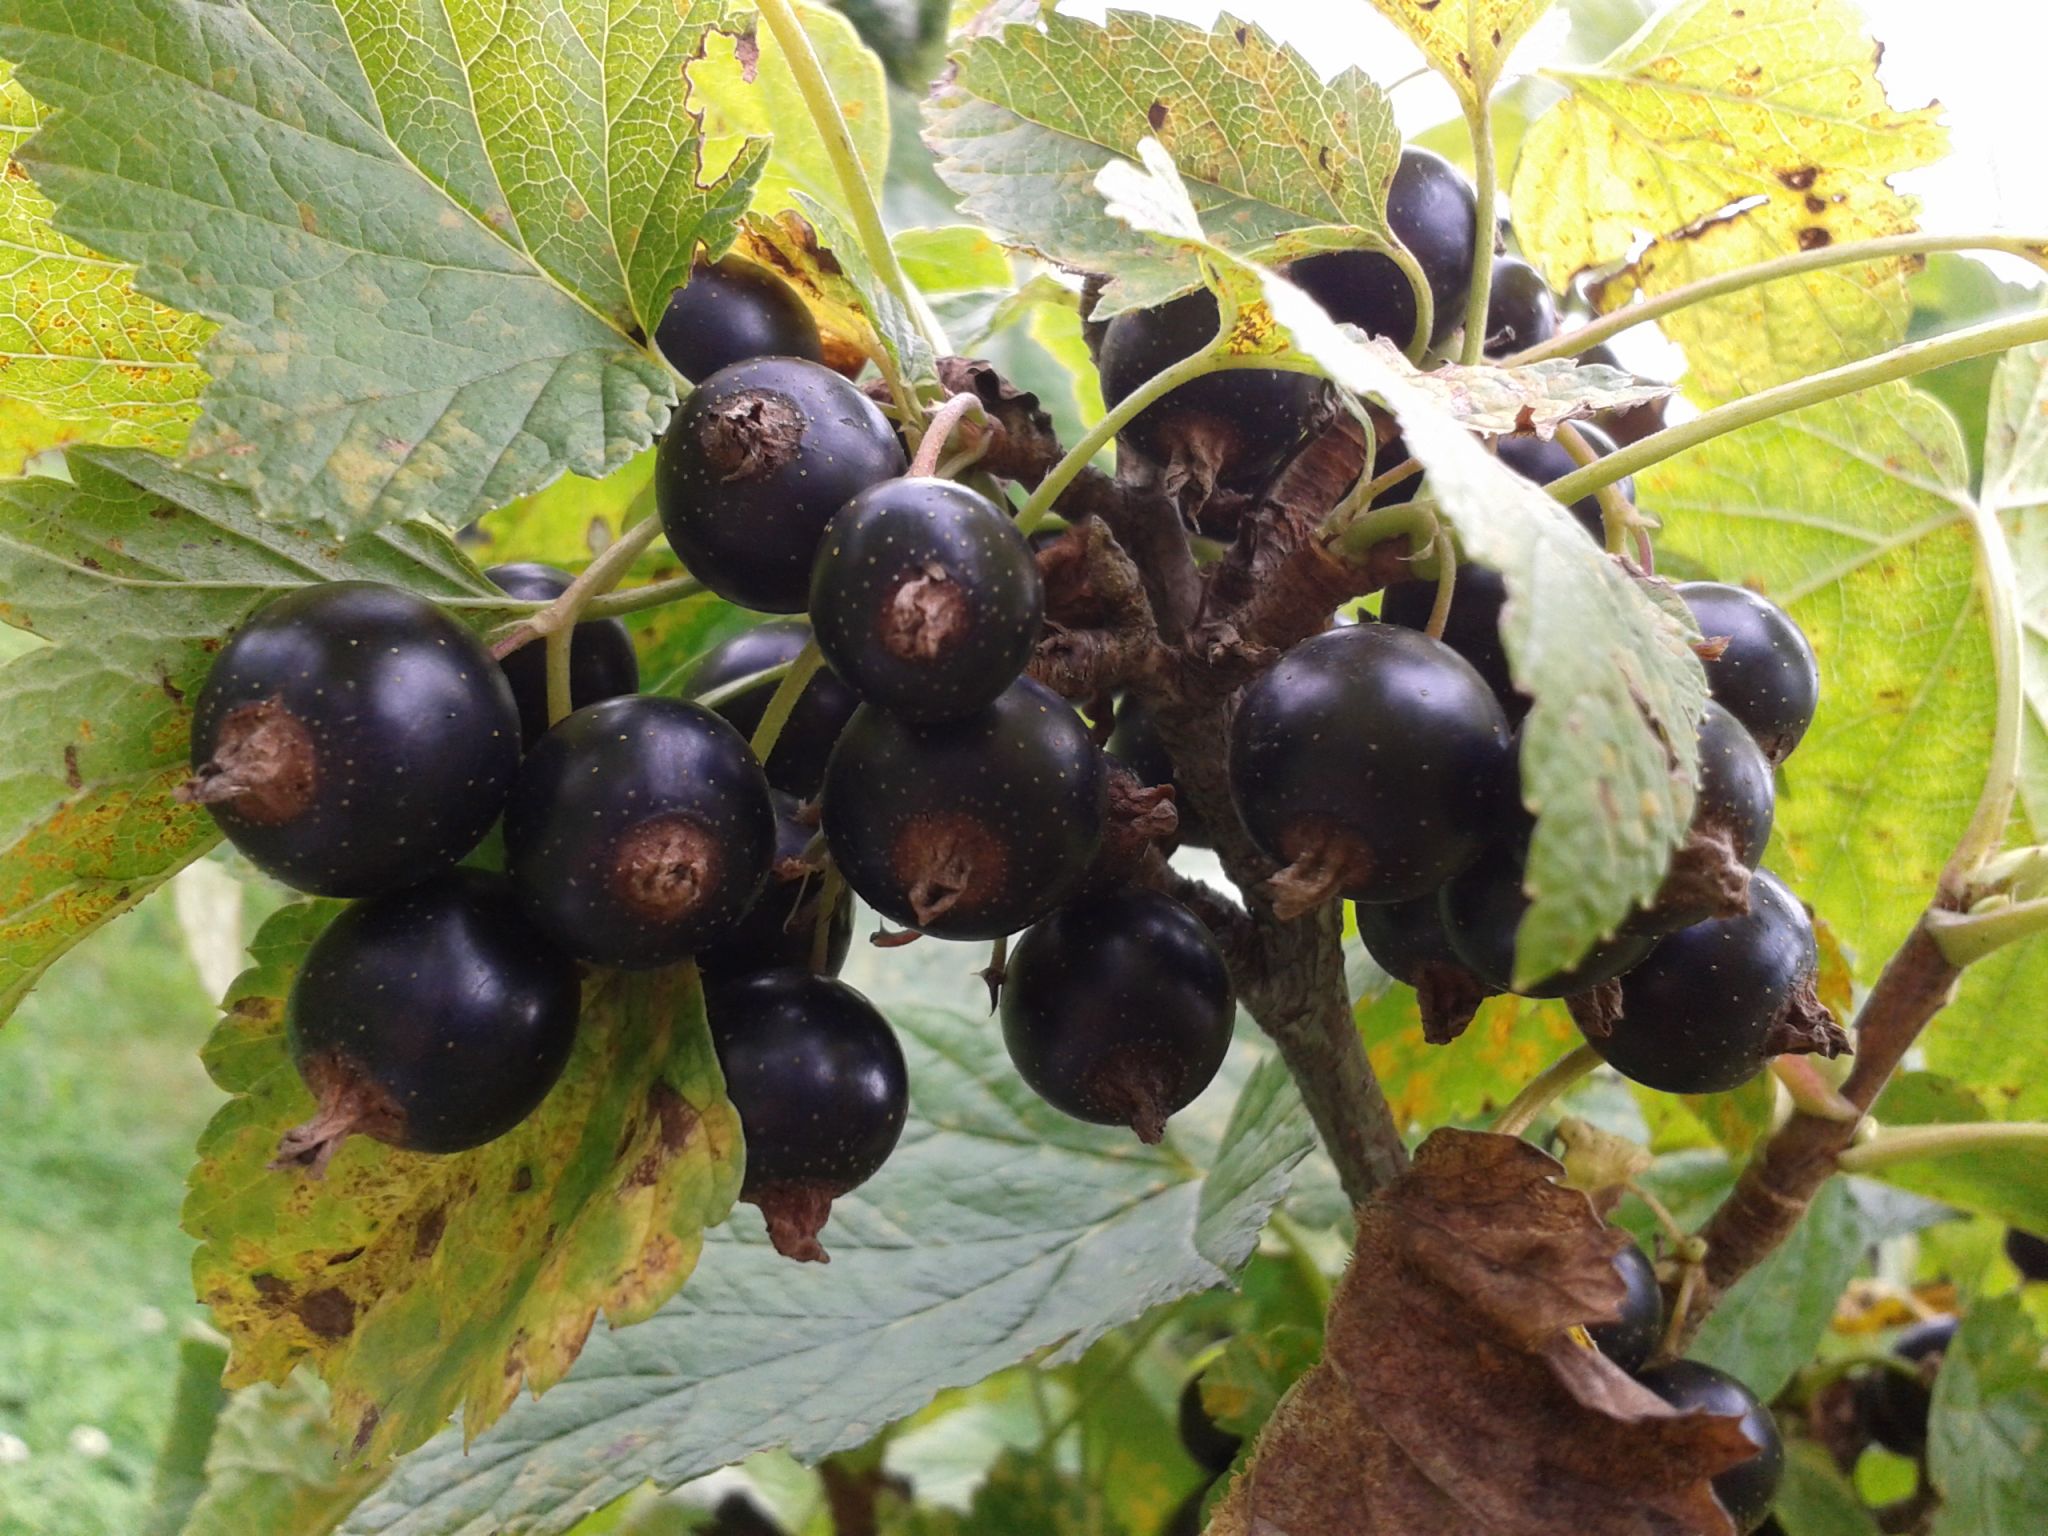
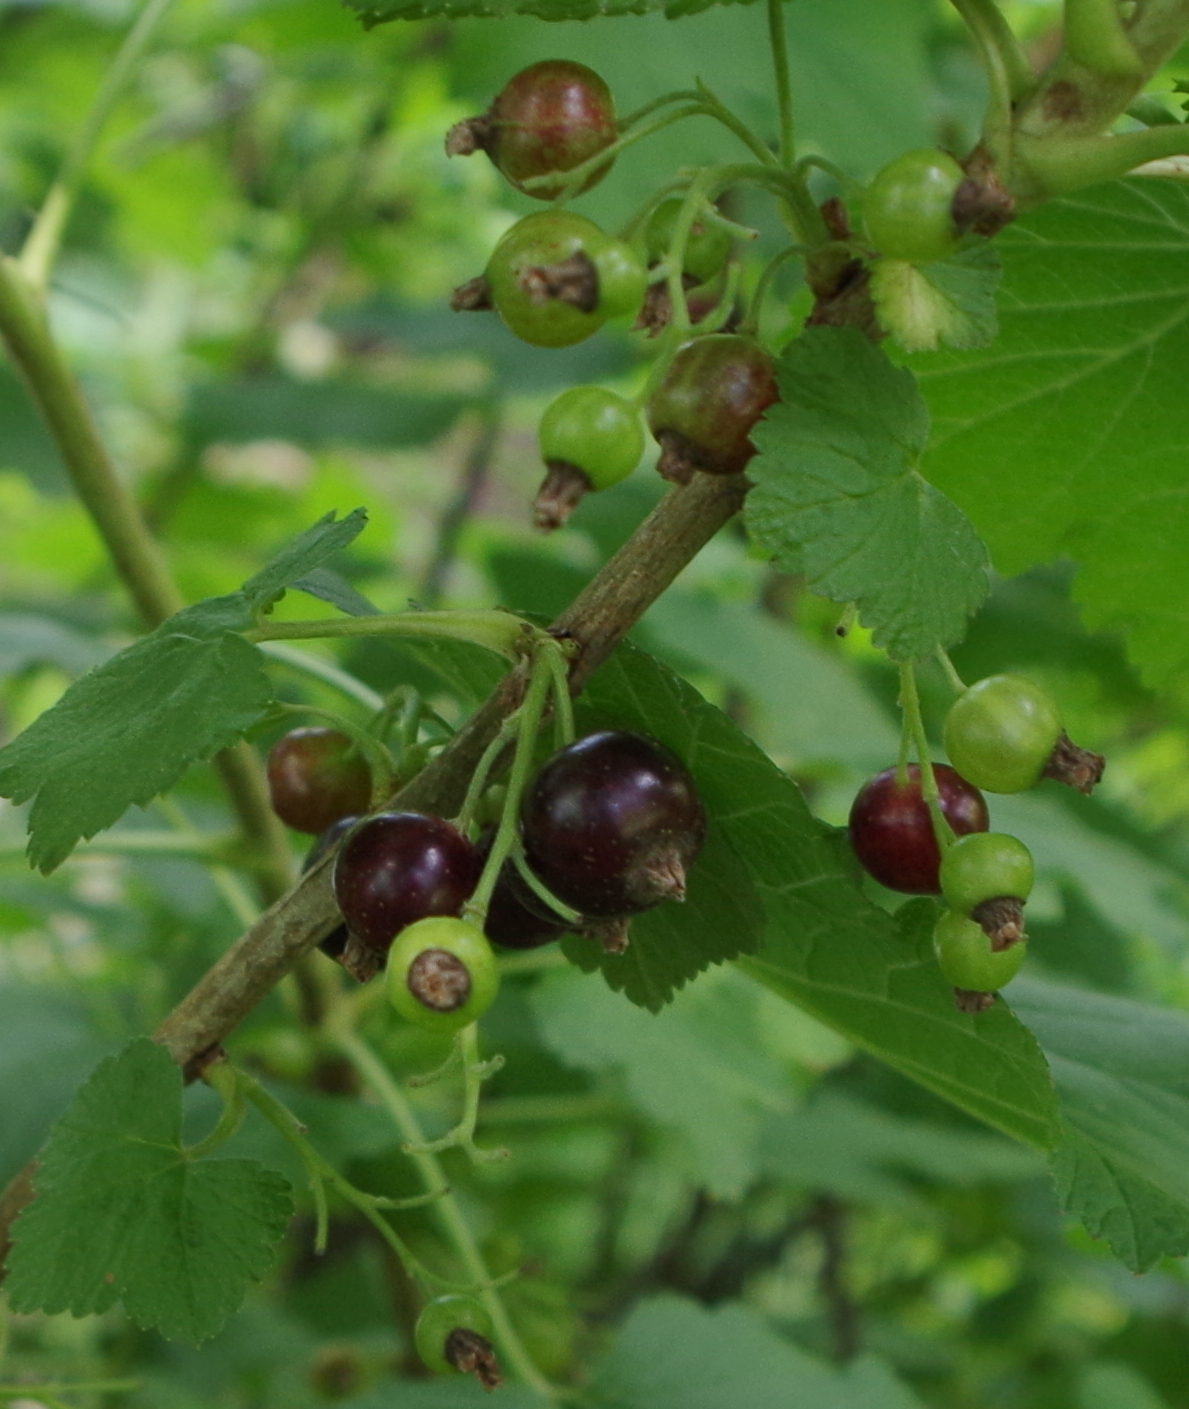
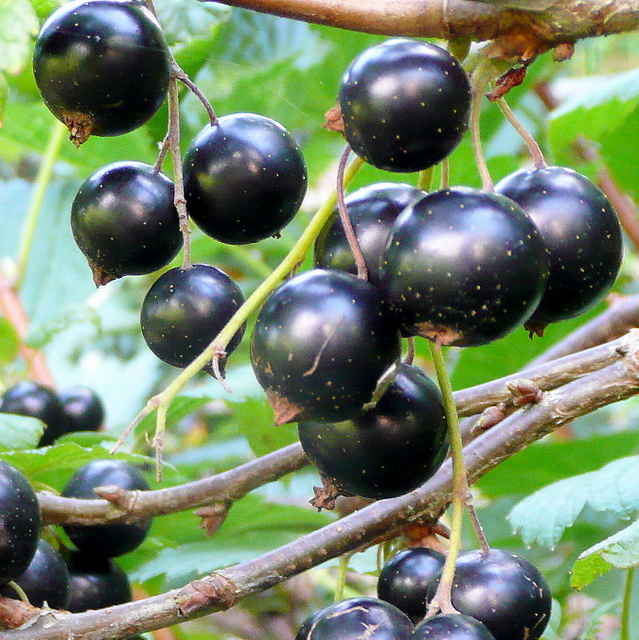
    Kuş Üzümü, Ribes Nigrum

    Kuş üzümünün faydaları nelerdir? Kuş üzümü neye iyi geliyor?

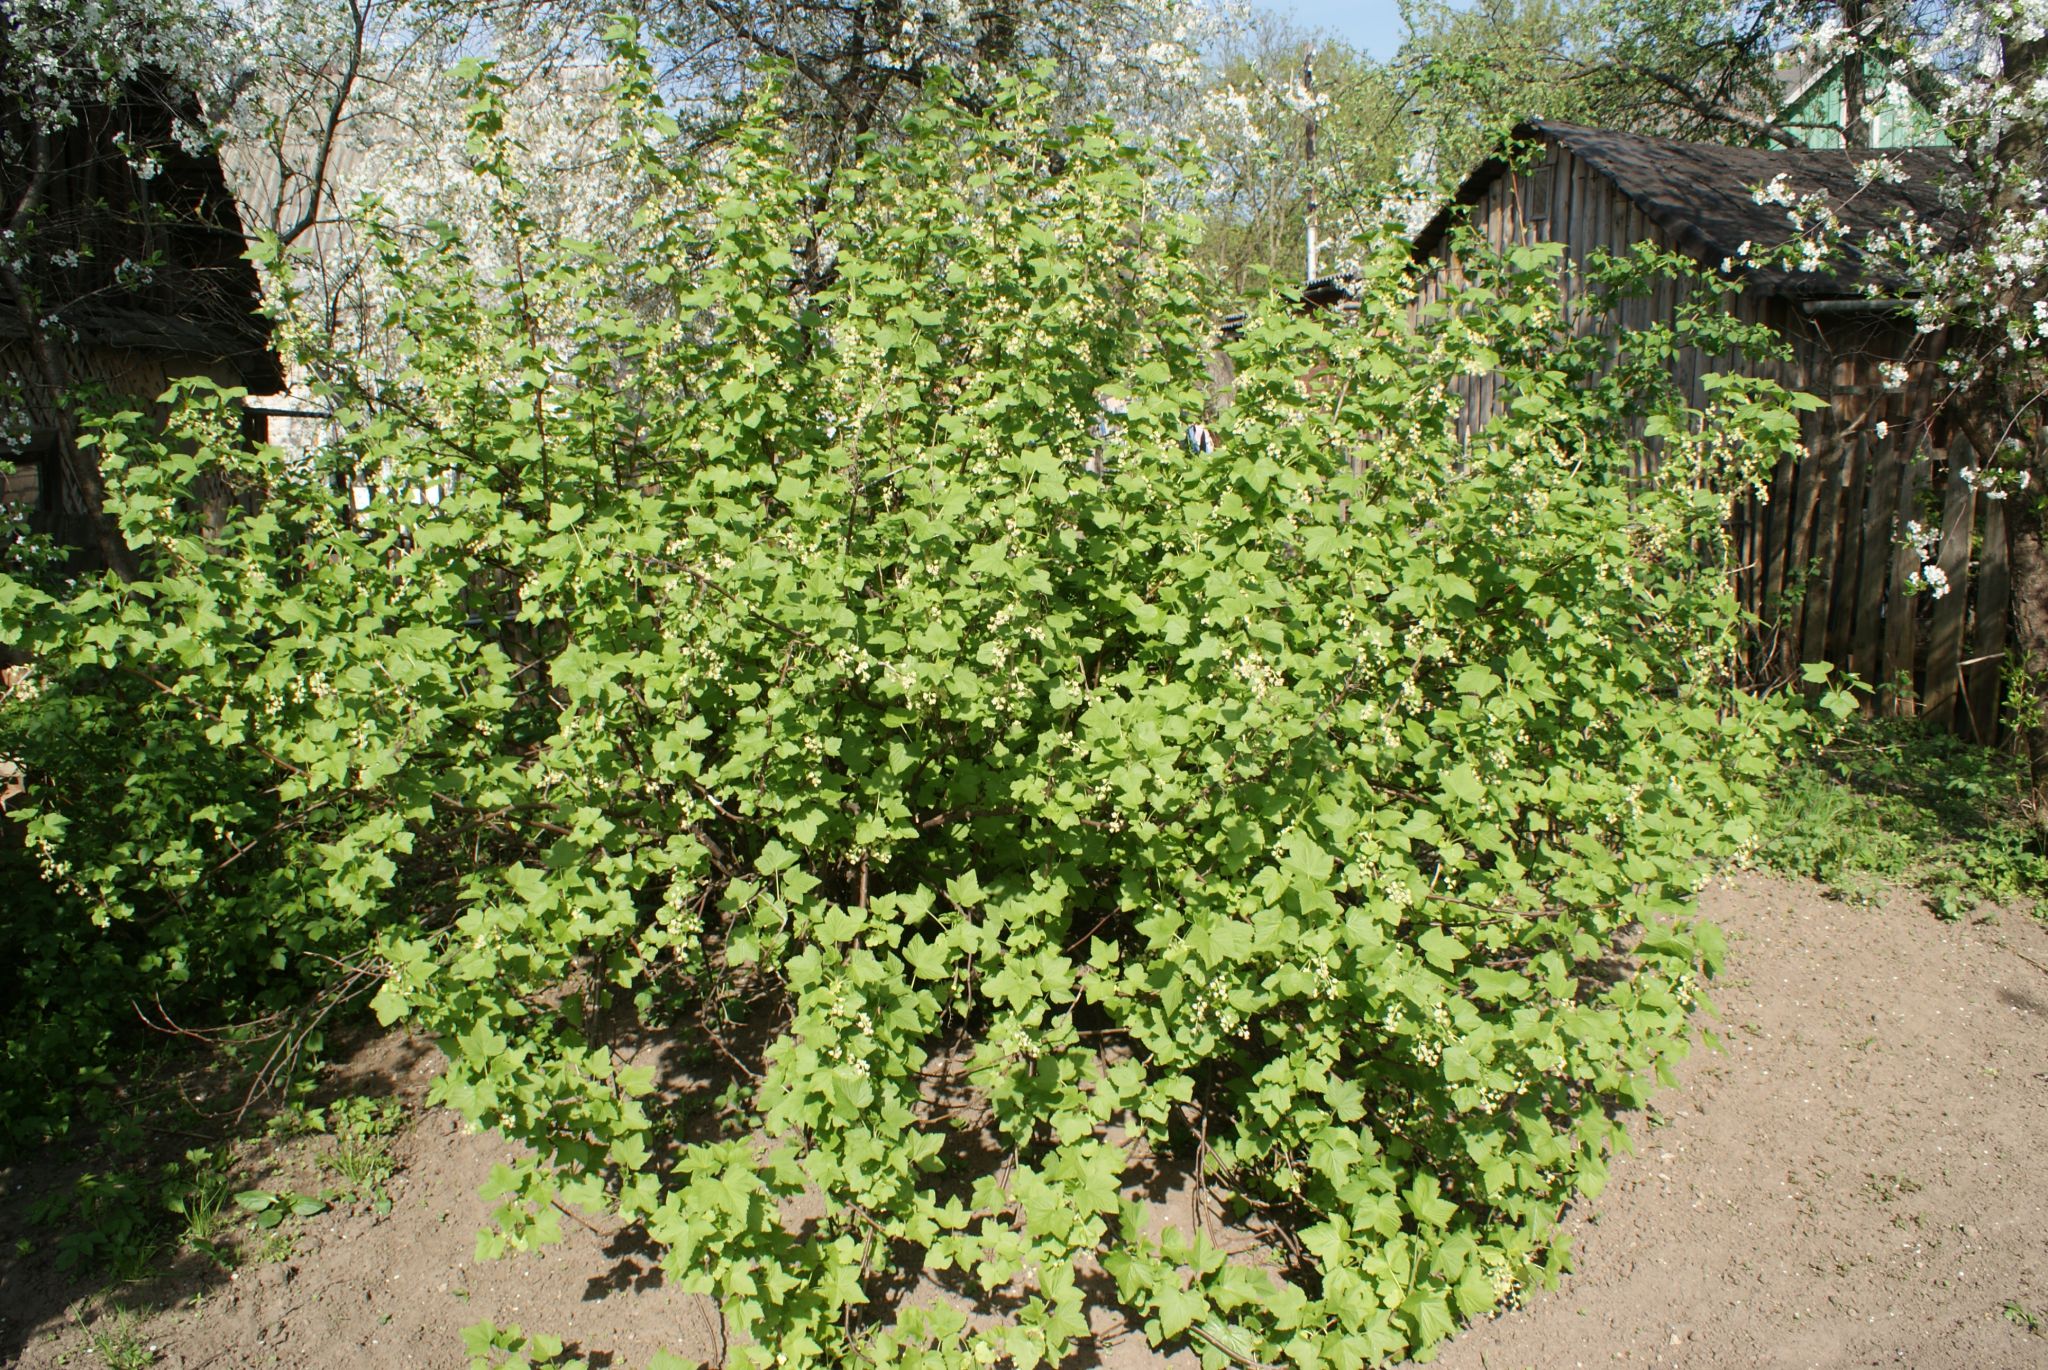
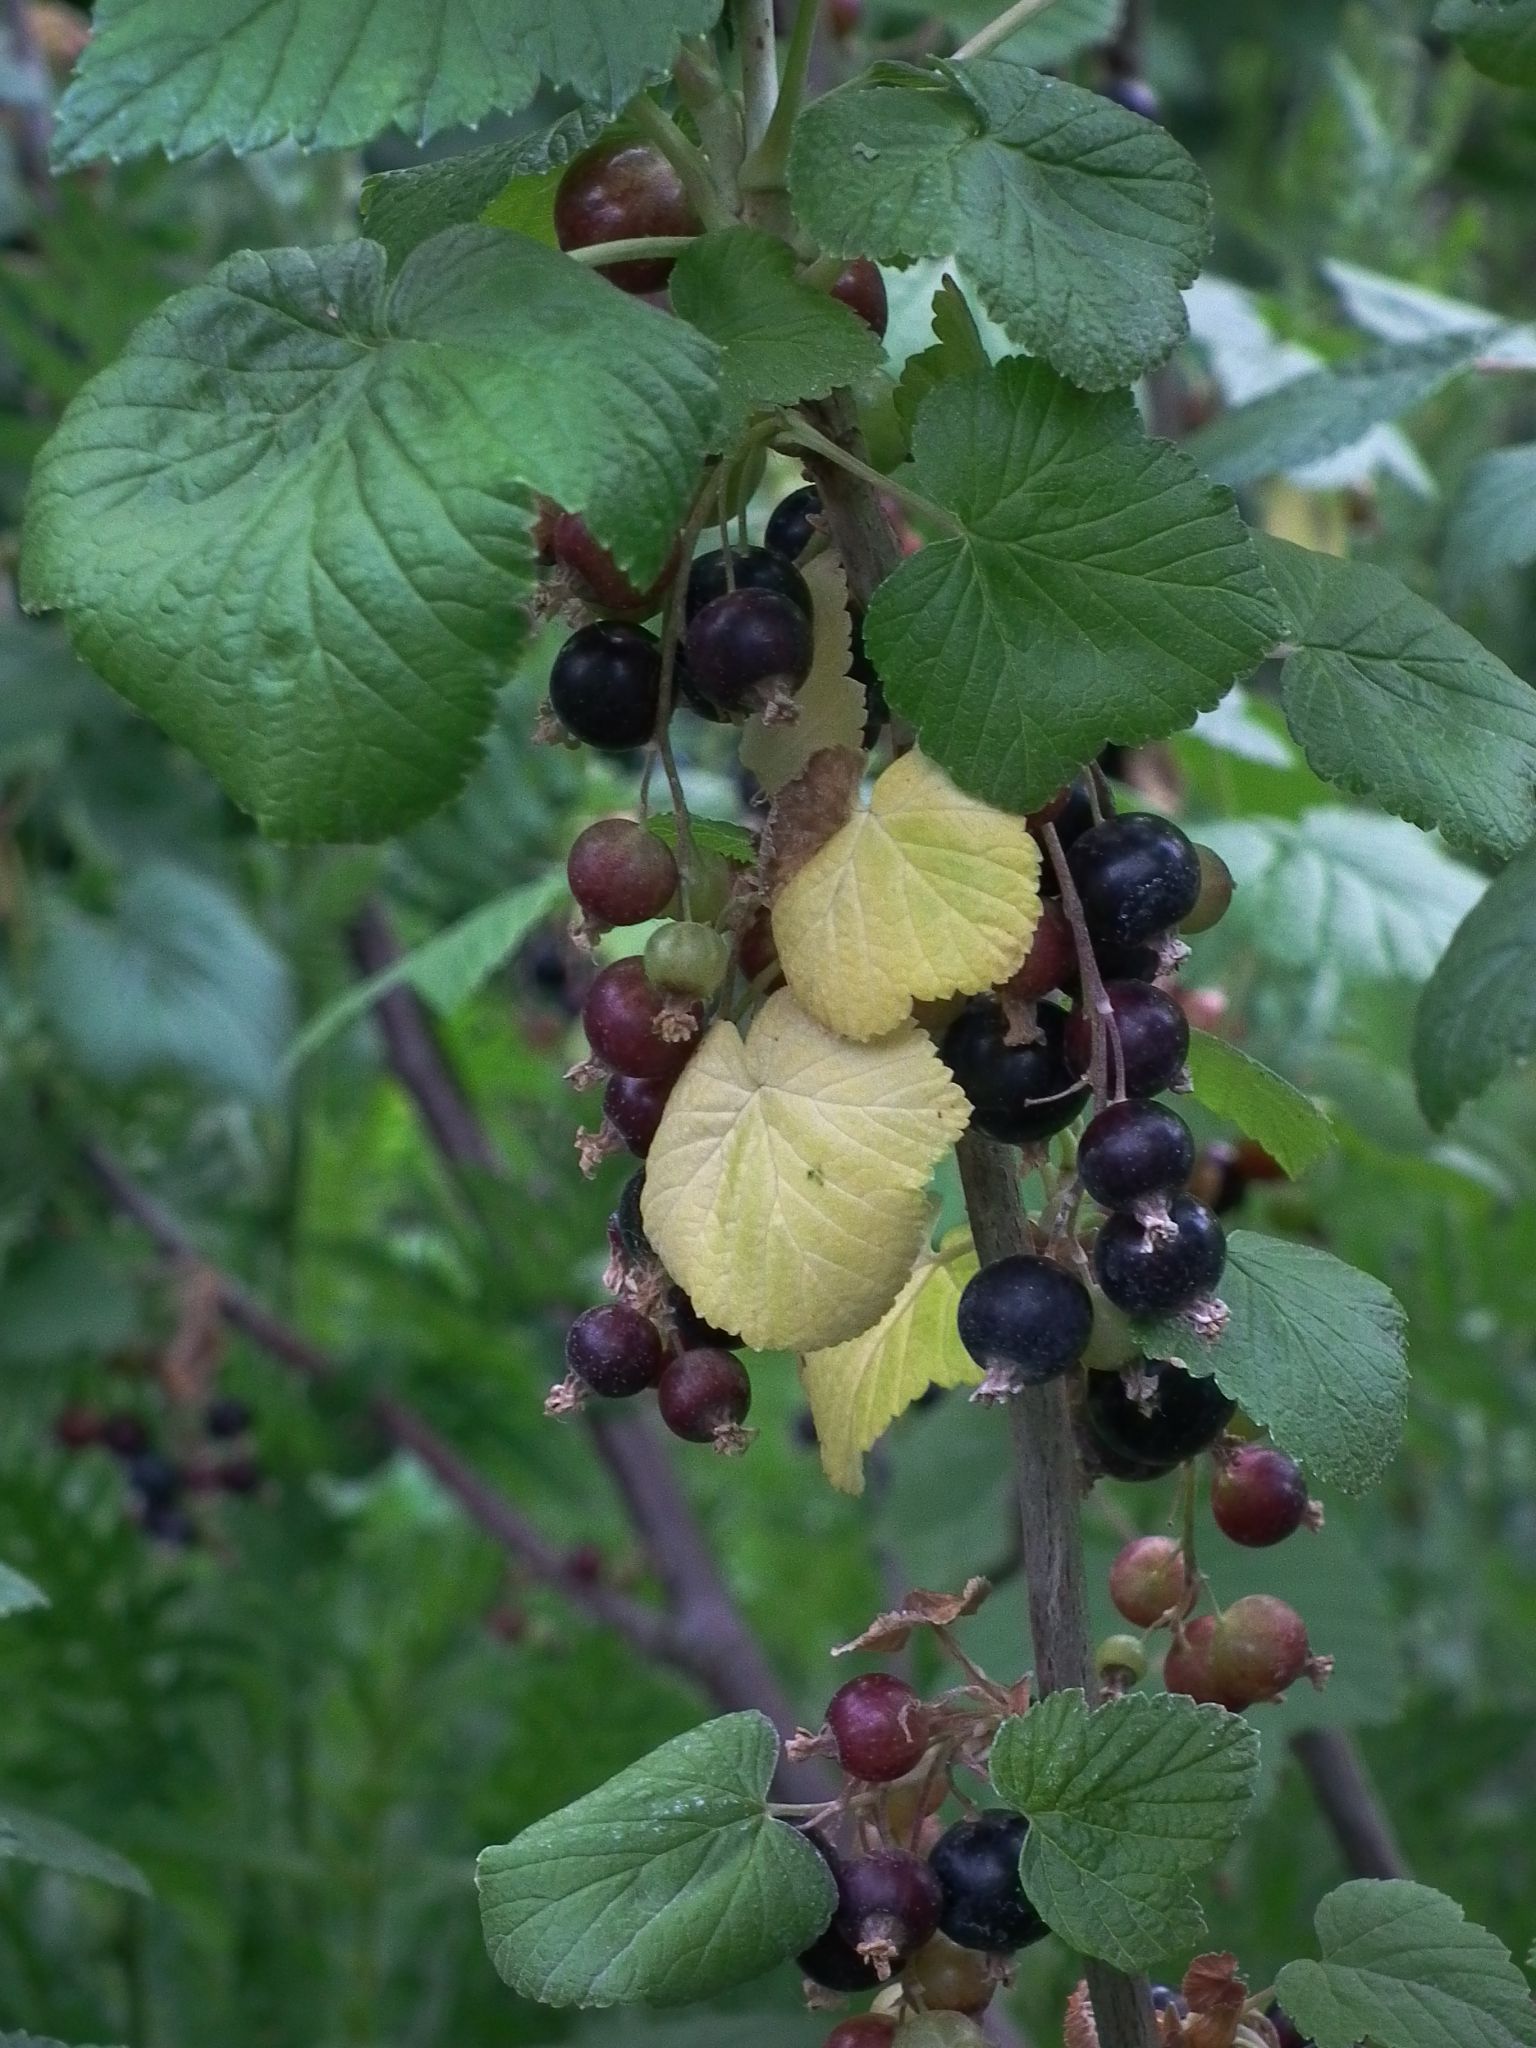
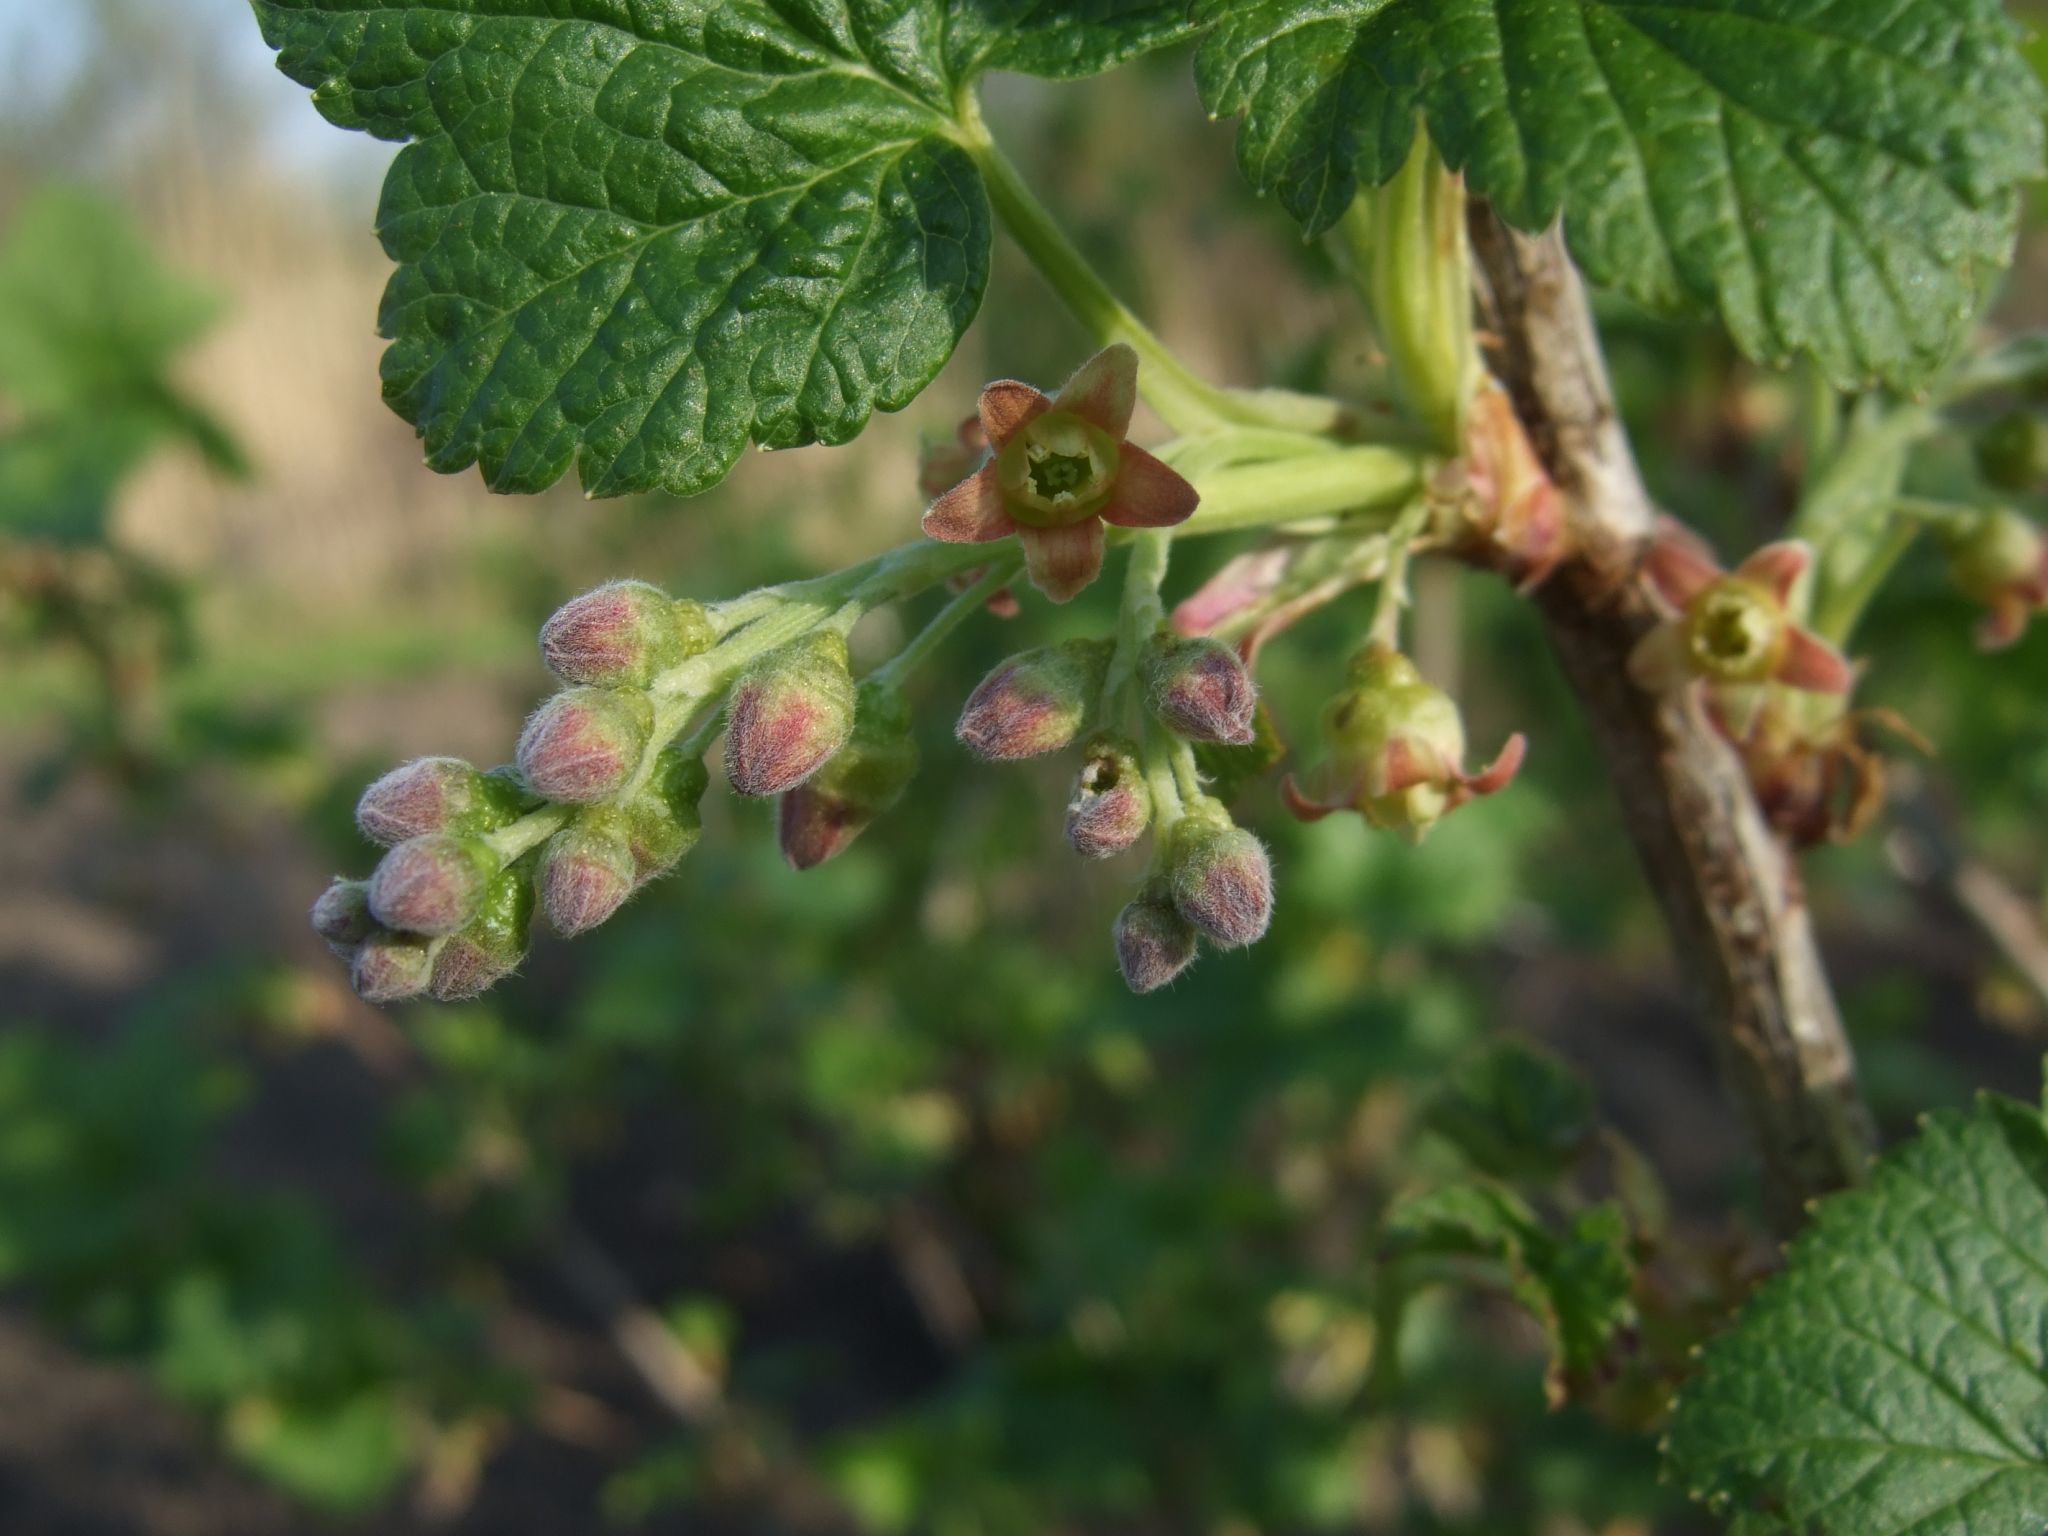
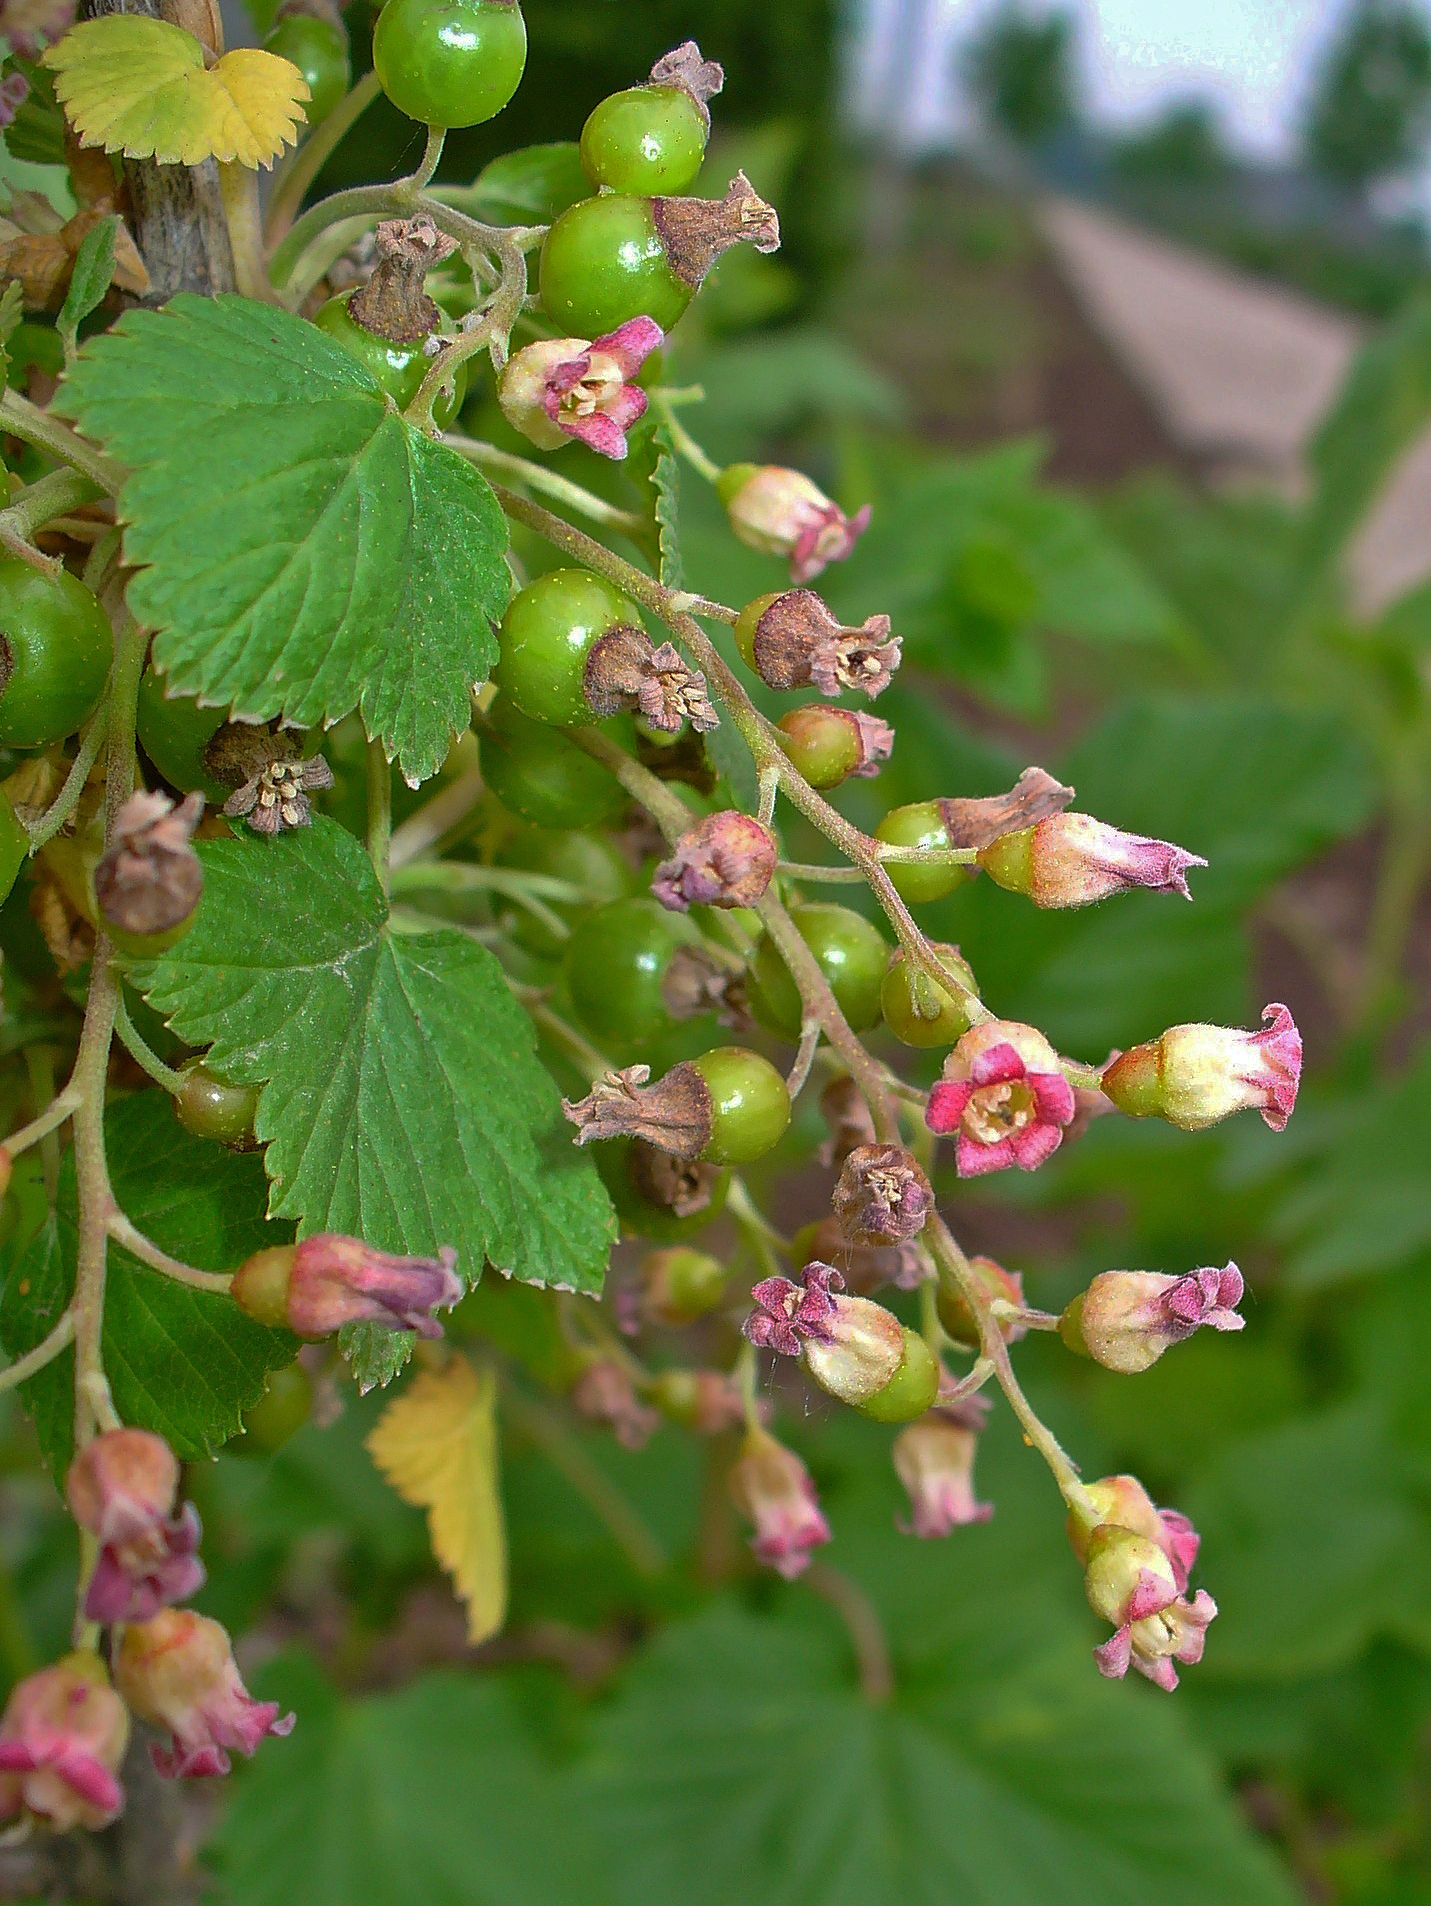
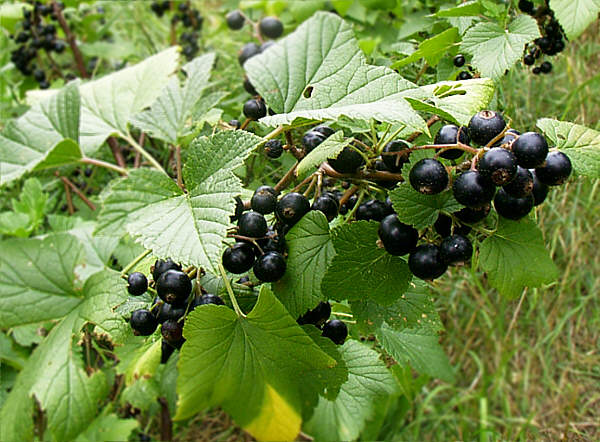
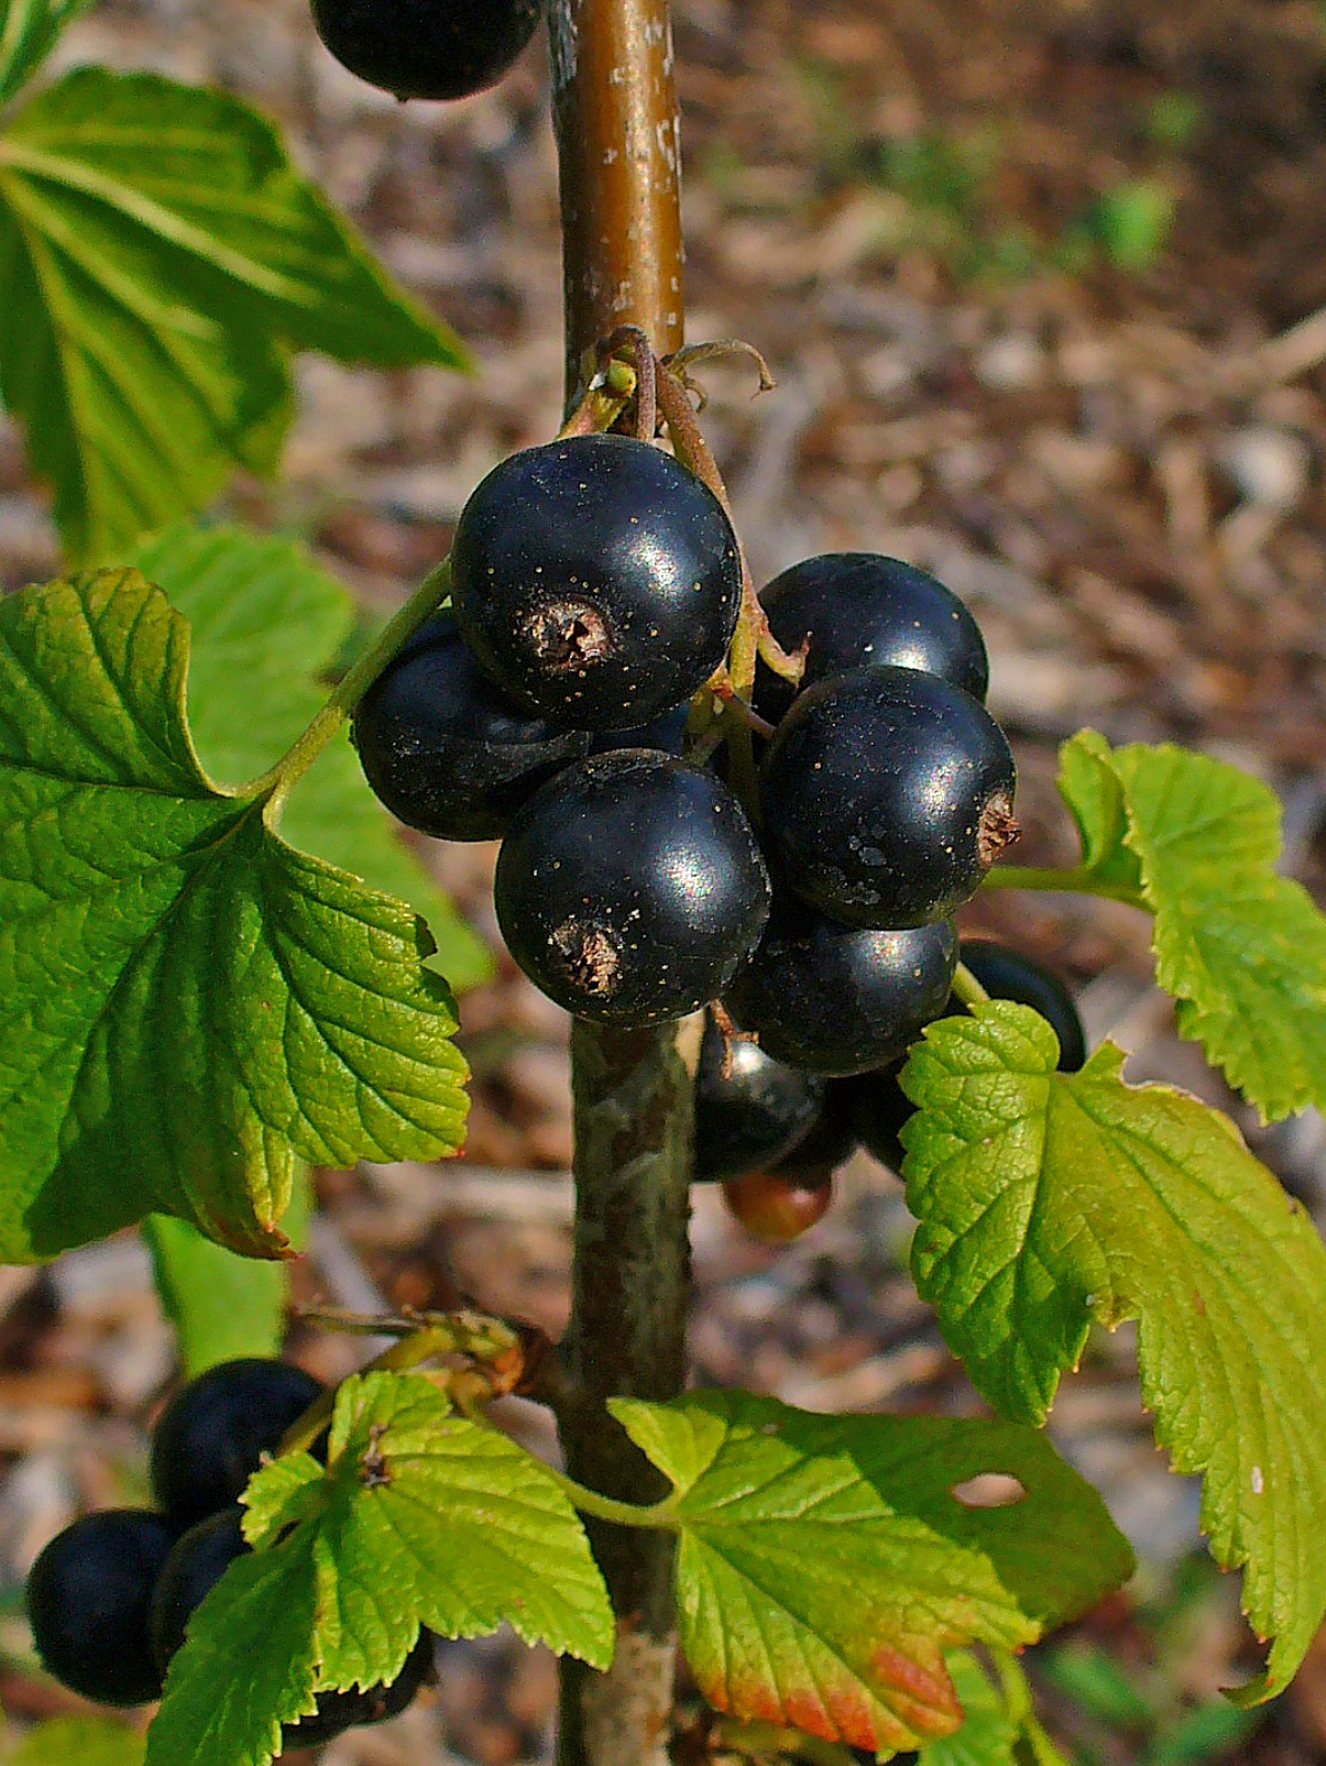
    C vitamini bakımından portakaldan daha güçlü olduğu bilinen kuş üzümü, Kuzey Amerika, Asya, Avrupa ve Kuzeybatı Afrika’da yetişir. Bilimsel olarak adı “ribes nigrum” olan kuş üzümü, Grossulariaceae familyasından gelen otsu bir meyvedir. Beyaz renkli çiçekleri ve siyah renkli meyveleri olan kuş üzümü ağacı genellikle 30-40 cm boyutlarındadır. Siyah rengin yanı sıra mor, yeşil ve kırmızı gibi farklı renkte çeşitleri bulunan kuş üzümü, kanser, kalp sağlığı, obezite ve hatta diyabet gibi çeşitli hastalıkların önlenmesine yardımcı olur. Peki, kuş üzümünün faydaları nelerdir? Kuş üzümü neye iyi geliyor? Merak edilen tüm detaylar haberimizdir


    Kuş üzümü C, B ve A vitaminleri için zengin bir kaynak olup, turunçgillerde bulunan C vitamininden yaklaşık 4 kat daha fazla miktarda C vitamini bulundurur. Pektin, fruktoz ve mineral de içeren kuş üzümünün tohumu, gamma linoleik asit olmak üzere birçok esansiyel yağ asitlerine sahiptir. Ayrıca kuş üzümü yaprakları ve tomurcukları fenolik bileşikler açısından zengindir ve yüzyıllardır bitkisel ilaçlarda kullanılmaktadır. Şimdi, kuş üzümünün faydaları nelerdir? Kuş üzümü neye iyi geliyor? Gelin hep birlikte bir göz atalım.

    KUŞ ÜZÜMÜNÜN FAYDALARI NELERDİR?

    Kuş üzümünün insan sağlığı açısından faydalarından bazıları şunlardır:

    – Karaciğer güçlendirir.
    – Sindirimi düzenler.
    – Bağışıklık sistemini güçlendirir.
    – Balgam söktürür.
    – Güneş yanıklarına karşı cildi korur.
    – Cilde parlaklık vererek kırışıkların oluşmasını önler ve aynı zamanda cilt sarkmasının önüne geçer.
    – Kabızlık sorununu giderir.
    – Kuş üzümü suyu idrar söktürür, böbrek taşlarının oluşumunu engeller.
    – Kolesterolü ve tansiyonu dengeler.
    – Hafızayı güçlendirerek Alzheimer riskini azaltır.
    – Vücudun enfeksiyonla savaşmasına yardımcı olur.
    – Antioksidan özellikleri – yaşlanmaya, kansere, kalp hastalıklarına ve iltihaplanmaya neden olan serbest radikallerin hücrelere zarar vermesine engel olur.
    – Yorgunluğu giderir.
    – İçeriğindeki yüksek demir minerali kansızlığı önlemeye yardımcıdır.
    – Menopoz ve ağrılı adet problemlerini hafifletir.
    – Topikal olarak yaraları iyileştirmek ve böcek ısırıklarını tedavi etmek için kullanılabilir.

    ...............................................
    Polifenol Açısından Zengin Frenk Üzümü Suyu, Portal Hipertansiyonlu Sirotik Sıçanların Mezenterik Arterindeki Endotel Disfonksiyonunu Önler: Oksidatif Stresin ve Anjiyotensin Sisteminin Rolü

    Şerzad Raşid 1, Nureddin İdris-Hoca 1, Cyril Burgu 1, Claire Kevers 2, Joël Pincemail 3, Mahmud Alhosin 1, Nelly Boehm 4, Monique Oswald-Mammosser 1 5, Valérie B Schini-Kerth 1
    Bağlantılar yıkılmak Bağlantılar
    • 11 UMR CNRS 7213 Biyofotonik ve Farmakoloji Laboratuvarı, Eczacılık Fakültesi, Strasbourg Üniversitesi, Illkirch, Fransa.
    • 22 Bitki ve Biyoloji Enstitüsü, Bitki Moleküler Biyolojisi ve Biyoteknoloji Birimi, Liège Üniversitesi, Liège, Belçika.
    • 33 Kardiyovasküler Cerrahi Anabilim Dalı ve CREDEC, Liège Üniversitesi, Liège, Belçika.
    • 44 Tıp Fakültesi, Histoloji Enstitüsü ve Strazburg Translasyonel Tıp Federasyonu (FMTS), Strazburg Üniversitesi, Strazburg, Fransa.
    • 55 Fizyoloji ve Solunum Fonksiyon Testleri Anabilim Dalı, Göğüs Hastalıkları, Strazburg Üniversite Hastaneleri, Tıp Fakültesi, Strazburg Üniversitesi, Strazburg, Fransa.
    Soyut

    Portal hipertansiyonlu kronik karaciğer hastalıkları, ilerleyici vazodilatasyon, endotel disfonksiyonu ve anjiyotensin sistemini içerdiği öne sürülen NADPH oksidazdan türetilen vasküler oksidatif stres ile karakterize edilir. Bu çalışma, zengin bir doğal antioksidan kaynağı olan polifenol bakımından zengin siyah frenk üzümü suyunun (PRBJ) oral alımının, kronik safra kanalı ligasyonu (CBDL) ile indüklenen bir sıçan siroz modelinde endotel disfonksiyonunu önleme olasılığını değerlendirdi ve eğer öyleyse, altta yatan mekanizma. Erkek Wistar sıçanlarına, CBDL ameliyatı veya sahte ameliyat öncesinde 3 hafta boyunca ya kontrol içme suyu ya da 60 mg/kg gallik asit eşdeğeri PRBJ içeren su verildi. 4 hafta sonra, organ odaları kullanılarak mezenterik arter halkalarındaki vasküler reaktivite değerlendirildi. Mezenterik arter halkalarında hem asetilkoline bağlı nitrik oksit (NO) hem de endotel bağımlı hiperpolarizasyon (EDH) aracılı gevşemeler, sahte sıçanlarla karşılaştırıldığında CBDL sıçanlarında önemli ölçüde azaldı. CBDL grubundaki arteriyel kesitlerde artan düzeyde oksidatif stres ve NADPH oksidaz alt birimleri, COX-2, NOS ve vasküler anjiyotensin sisteminin ekspresyonu gözlenir. Kronik PRBJ alımı, CBDL'nin neden olduğu bozulmuş EDH aracılı gevşemeyi, oksidatif stresi ve arter duvarındaki farklı hedef proteinlerin ekspresyonunu önledi. Ek olarak PRBJ, proinflamatuar sitokinlerin (interlökin [IL]-1a, monosit kemotaktik protein 1 ve tümör nekroz faktörü a) plazma seviyesinde CBDL'nin neden olduğu artışı ve anti-inflamatuar sitokin IL-4'ün azalmasını önledi. Hep birlikte,

    Anahtar Kelimeler: anjiyotensin II; frenk üzümü; endotel disfonksiyonu; inflamatuar sitokinler; portal hipertansiyon; Reaktif oksijen türleri.

    ..........................................
    Spontan hipertansif sıçanlarda çuha çiçeği, siyah frenk üzümü, hodan veya mantar yağları ile zenginleştirilmiş diyetlerin kan basıncı ve baskı tepkileri üzerindeki karşılaştırmalı çalışması

    MM Engler 1
    Bağlantılar yıkılmak Üyelik
    • 1Fizyolojik Hemşirelik Bölümü, California Üniversitesi, San Francisco 94143-0610.
    Soyut


    Gama-linolenik asit (GLA) ile zenginleştirilmiş yağların kan basıncı ve baskı tepkileri üzerindeki etkileri spontan hipertansif sıçanlarda (SHR) incelenmiştir. Sıçanlar 7 hafta boyunca çuha çiçeği (EPO), siyah frenk üzümü (BCO), hodan (BOR) veya mantar (FGO) yağları içeren saflaştırılmış diyetlerle beslendi. GLA yağları ile zenginleştirilmiş diyetle beslenen SHR sıçanlarında kan basıncında önemli düşüşler elde edildi. Antihipertansif etki, norepinefrin veya anjiyotensin II'ye karşı artan baskı tepkisi ile ilişkili değildi. Ayrıca, kalsiyum kanal blokeri verapamile karşı kan basıncı yanıtlarında da herhangi bir farklılık bulunmadı. Sonuçlar, GLA ile zenginleştirilmiş yağların SHR sıçanında hipertansiyon gelişimini engellediğini göstermektedir.

    ..............................

    Yeni bir botanik formül, göz yorgunluğunu ve kuru gözü iyileştirir: randomize, çift kör, plasebo kontrollü bir çalışma

    Juntao Kan 1, Min Wang 2, Ying Liu 3, Hongyue Liu 1, Liang Chen 1, Xue Zhang 1, Chengrong Huang 4, Bryan Y Liu 5, Zhensheng Gu 6, Haziran Du 1
    Bağlantılar genişletmekÜcretsiz makale Soyut


    Arka plan: Video görüntüleme ünitelerinin sık kullanımıyla birlikte göz yorgunluğu dünya çapında daha yaygın hale geliyor. Göz yorgunluğu semptomlarının şiddetlenmesini önlemek için alternatif bir beslenme stratejisine ihtiyaç vardır.

    Amaçlar: Amaç, lutein ester, zeaksantin ve frenk üzümü, krizantem ve goji meyvesi ekstraktlarından oluşan yeni bir botanik kombinasyonunun, randomize, çift kör, plasebo kontrollü bir klinik çalışmada göz yorgunluğu olan yetişkinler üzerindeki koruyucu etkisini değerlendirmekti.

    Yöntemler: 360 katılımcıyı, 90 gün boyunca günde bir kez plasebo ve formülümüzün 3 dozunu (6 mg, 10 mg veya 14 mg lutein içeren çiğnenebilir tabletler) almak üzere rastgele 4 gruba ayırdık. Her katılımcının çalışma sırasında başlangıçta (V1), 45 günde (V2) ve 90 günde (V3) 3 ziyareti vardı.

    Sonuçlar: Formüle müdahale, göz ağrısı, bulanık görme, kuru göz, yabancı cisim hissi ve sulanma dahil olmak üzere göz yorgunluğu semptomlarının bireysel puanlarını iyileştirdi. Plasebo ile karşılaştırıldığında, formül 3 dozun tamamında göz yorgunluğu semptomlarının toplam skorunu önemli ölçüde azalttı ve hem V2 hem de V3'te görme kalıcılık süresini arttırdı. Schirmer testine göre, hem 10 mg hem de 14 mg lutein formülü gruplarında, plaseboya kıyasla V3'te gözyaşı sekresyonu iyileşti. Keratografi sonuçları, formül müdahalesinden sonra ilk gözyaşı kırılma süresinin, ortalama gözyaşı kırılma süresinin ve gözyaşı menisküs yüksekliğinin önemli ölçüde arttığını gösterdi. Formül, 3 dozun tamamında, plaseboyla karşılaştırıldığında V2 ve V3'teki maküler pigment optik yoğunluğunu önemli ölçüde arttırdı.

    Sonuçlar: Botanik formülümüz, retina yapısını değiştirmeden göz yorgunluğunu, göz kuruluğunu ve maküla fonksiyonunu iyileştirir ve dolayısıyla ciddi yan etkilere neden olmadan göz yorgunluğunun iyileştirilmesinde etkili bir beslenme stratejisi olarak hizmet edebilir.Klinik Araştırma Kaydı: chictr.org.cn (ChiCTR1800018987).

    Anahtar Kelimeler: frenk üzümü; krizantem; kuru göz; göz yorgunluğu; Goji meyvesi; keratografi; lutein; maküler pigment optik yoğunluğu; optik koherens tomografi; zeaksantin.

    Telif Hakkı © Amerikan Beslenme Derneği 2020 adına Yazar(lar).

    ............................................... Siyah frenk üzümünden türetilen polisakkaritin Japon sedir polenozunun klinik semptomlarını hafifletme üzerindeki etkileri: randomize, çift kör, plasebo kontrollü bir çalışma

    Kenji Dejima 1, Akihiro Ohshima , Takaaki Yanai , Reiko Yamamoto , Ryoji Takata , Toshikazu Yoshikawa
    Bağlantılar yıkılmak ÜyelikÜcretsiz makale Soyut


    2006 yılında randomize, çift-kör, plasebo kontrollü bir çalışmayla, siyah frenk üzümünden türetilen, Cassis polisakkariti (CAPS) adı verilen polisakkaritin, Japon sedir polinosis semptomlarını inhibe etme ve yaşam kalitesini iyileştirmedeki etkinliğini araştırdık. Toplam 28 denek, çalışmaya kaydoldu ve her gruptan 10 denek deneyi tamamladı. Herhangi bir zamanda günlük semptom günlüğündeki herhangi bir semptomun haftalık ortalama değerinde CAPS ve plasebo grubu arasında anlamlı bir fark olmamasına rağmen, CAPS grubunda daha küçük derecede nihai semptom alevlenmesi bulundu. Japonya rino-konjonktivit yaşam kalitesi anketi değerlendirmesinde, alt kabukta şişlik ve hapşırma, burun kaşıntısı, göz kaşıntısı ve sulanma ile plasebo grubunda son olarak skorda önemli bir kötüleşme gözlendi. CAPS grubunda gözlemlenen değişiklikler ise anlamlı değildi. Sonuç olarak, bulgularımız CAPS'ın Japon sedir polenozunun tedavisine yardımcı bir gıda takviyesi olarak faydalı olabileceğini açıkça göstermektedir.

    .................................................. .......

    Siyah frenk üzümü antosiyaninleri, hepatoselüler karsinomun sıçan modelinde Nrf2 aracılı antioksidan mekanizmalar yoluyla oksidatif stresi ortadan kaldırır

    Roslin J Thoppil 1, Deepak Bhatia , Kendra F.Barnes , Erzsebet Haznagy-Radnai , Judit Hohmann , Altaf S Darveş , Anupam Bishayee
    Bağlantılar yıkılmak Üyelik
    • 1Kanser Tedavisi ve Kemoprevensiyon Grubu, Eczacılık Bilimleri Bölümü, Eczacılık Fakültesi, Kuzeydoğu Ohio Tıp Üniversitesi, Rootstown, OH 44272, ABD.
    Soyut

    Dünya çapında her yıl yaklaşık 1 milyondan fazla ölümün bildirildiği en ölümcül kanserlerden biri olarak kabul edilen hepatoselüler karsinom (HCC), bilinen etkili bir tedavisi olmayan yıkıcı bir hastalık olmaya devam ediyor. Bu nedenle, potansiyel kanser risklerini ve mortaliteyi önlemek için ideal, etkili ve güvenli bir tedavi yöntemi sunan kemopreventif stratejiler devreye giriyor. HCC'nin gelişimi ve ilerlemesi ile ilgili önemli bir predispozan durum oksidatif strestir. Daha önce antosiyanin açısından zengin siyah frenk üzümü deri ekstraktının (BCSE) sıçanlarda dietilnitrozamin (DENA) ile başlatılan hepatokarsinojeneze karşı çarpıcı bir kemopreventif etkisi olduğunu bildirmiştik. Bu çalışma, deneysel hepatokarsinojeneze karşı daha önce gözlemlenen kemopreventif etkilerde yer alan siyah frenk üzümü antosiyaninlerinin altta yatan antioksidan mekanizmalarını açıklamayı amaçlamaktadır. DENA tehdidinden dört hafta önce ve 18 hafta sonra uygulanan diyet BCSE (100 ve 500 mg/kg), anormal lipit peroksidasyonunu, protein oksidasyonunu ve indüklenebilir nitrik oksit sentaz (iNOS) ve 3-nitrotirozin (3-NT) ekspresyonunu bir dozda azalttı -duyarlı moda. Mekanistik çalışmalar, BCSE'nin, DENA ile başlatılan hayvanlarda NAD(P)H:kinon oksidoredüktaz, glutatyon S-transferaz ve üridin difosfat-glukuronosiltransferaz izoenzimleri gibi bir dizi hepatik antioksidan ve karsinojen detoksifiye edici enzimin gen ekspresyonunu yukarı regüle ettiğini ortaya çıkardı. Nükleer faktör E2 ile ilişkili faktör 2'nin (Nrf2) protein ve mRNA ifadeleri, BCSE tedavisi ile önemli ölçüde yükseldi; bu, çeşitli temizlik genlerinin yukarı regülasyonuna yol açan Nrf2 tarafından düzenlenen antioksidan yolun koordineli bir aktivasyonuna dair doğrudan bir kanıt sağladı. Çalışmamızın sonuçları, siyah frenk üzümü biyoaktif antosiyaninlerin, Nrf2 sinyal yolunun aktivasyonu yoluyla oksidatif stresi hafifleterek DENA'nın neden olduğu hepatokarsinojeneze karşı kemopreventif etkiler gösterdiğine dair önemli kanıtlar sağlar.
    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

  • #2
    Frenk Üzümü Sıçanlarda Yüksek Fruktoz Diyetinin Neden Olduğu Metabolik Sendromu Bastırıyor

    Ji Hun Park , 1 Min Chul Kho , 1, 2 Hye Yoom Kim , 1, 2 You Mee Ahn , 1, 2 Yun Jung Lee , 1, 2 Dae Gill Kang , 1, 2, 3 ve Ho Sub Lee 1, 2, 3 , *
    Yazar bilgileri Makale notları Telif Hakkı ve Lisans bilgileri PMC Yasal Uyarı
    1 Hanbang Vücut Sıvısı Araştırma Merkezi, Wonkwang Üniversitesi, Shinyong-dong, Iksan, Jeonbuk 570-749, Kore Cumhuriyeti
    2 Doğu Tıp Fakültesi ve Doğu Tıp Profesyonel Yüksek Okulu, Wonkwang Üniversitesi, Shinyong-dong, Iksan, Jeonbuk 570-749, Kore Cumhuriyeti
    3 Brain Korea (BK) 21 Plus Team, Profesyonel Doğu Tıp Enstitüsü, Wonkwang Üniversitesi, Iksan, Jeonbuk 540-749, Kore Cumhuriyeti
    *Ho Sub Lee: rk.ca.ukw@tsoh
    Akademik Editör: Abbas A. Mehdi
    Şuraya git:

    Soyut
    Artan fruktoz alımı obezite, hiperglisemi, dislipidemi ve metabolik sendromla ilişkili hipertansiyonla ilişkilendirilmiştir. Frenk üzümü ( Ribes nigrum); BC) Avrupa'da bir bahçe ürünüdür. Metabolik sendromu tetiklemek için Sprague-Dawley sıçanları %60 yüksek fruktozlu diyetle beslendi. BC ile tedavi (8 hafta boyunca 100 veya 300 mg/kg/gün), metabolik sendromun indüklendiği sıçanlarda artan karaciğer ağırlığını, epididimal yağ ağırlığını, C-reaktif proteini (CRP), total bilirubini, leptini ve insülini önemli ölçüde baskıladı. BC, metabolik sendromun indüklendiği sıçanlarda adiposit boyutunun artmasını ve hepatik trigliserit birikimini belirgin şekilde önledi. BC, kastaki insülin reseptör substrat-1'in (IRS-1) ve fosforile AMP ile aktifleştirilen protein kinazın (p-AMPK) oral glukoz toleransını ve protein ekspresyonunu baskıladı. BC, plazma toplam kolesterol, trigliserit ve LDL içeriğini önemli ölçüde baskıladı. BC, aorttaki endotelin-1 ve adezyon moleküllerinin aşağı regülasyonunu indükleyerek endotel disfonksiyonunu baskıladı. Torasik aort halkalarının sodyum nitroprussid ve asetilkolin tarafından vasküler gevşemesi BC ile iyileştirildi. Bu çalışma, dislipidemi, hipertansiyon, insülin direnci ve obezitede iyileşmeler göstererek BC'nin metabolik sendroma karşı potansiyel koruyucu etkisine dair kanıt sunmaktadır.canlı olarak .

    Şuraya git:

    1. Giriş
    Metabolik sendrom, obezite, hiperürisemi, hiperinsülinemi, hipertansiyon ve dislipideminin değişken bir şekilde bir arada bulunmasıyla karakterize edilen bir hastalık durumudur. Metabolik sendromun patogenezinde kardiyorenal sistemdeki birçok organ yer alır [ 1 ]. Ulusal Kolesterol Eğitim Programı Erişkin Tedavi Paneli III (NCEP-ATP III) tarafından tanımlanan metabolik sendromlu hastalar, aşağıdaki özelliklerden 3 veya daha fazlasını aynı anda sergiler: artan bel çevresi, yüksek kan basıncı, azalmış yüksek yoğunluklu lipoprotein (HDL) seviyesi , yüksek trigliserit seviyesi ve hiperglisemidir .

    Sakkaroz ve yüksek fruktozlu mısır şurubu gibi ilave şekerlerde bulunan fruktozun epidemiyolojik olarak metabolik sendromla bağlantısı vardır. İşlenmiş gıdalarda ve alkolsüz içeceklerde yaygın olarak kullanılan fruktoz tüketiminin artması, metabolik sendromun artan prevalansına katkıda bulunan en önemli faktörlerden biridir [ 4 ]. Son bulgular, diyetteki fruktozun metabolik bozuklukları hızlandırdığını ve oksidatif hasarı tetiklediğini göstermiştir [ 5 ]. Yüksek fruktozlu bir diyet, genellikle hiperinsülinemi, hipertansiyon, dislipidemi ve düşük HDL düzeyiyle sonuçlanan, iyi karakterize edilmiş bir metabolik sendromu indükler [ 6 ]. Yakın zamanda yapılan bir çalışma böbrek hasarının metabolik sendromla ilişkili olduğunu öne sürdü.] Karaciğerin yüksek seviyelerde fruktoza maruz kalması, lipogenezin ve trigliserit birikiminin hızlı uyarılmasına yol açar, bu da insülin duyarlılığının azalmasına ve hepatik insülin direnci/glukoz intoleransına yol açar [8 ] .

    Frenk üzümü ( Ribes nigrum ; BC) Rusya, Polonya, Almanya, İskandinavya, İngiltere, Yeni Zelanda ve birçok Doğu Avrupa ülkesinde değerli bir bahçecilik ürünüdür. Dünya çapında yıllık BC üretimi yaklaşık 500.000 ila 600.000 ton arasındadır [ 9 ]. BC, antiülser, antikonvülsiyon ve antidiyare etkilerinin yanı sıra karsinomlara, diyabete ve gerileyici hastalıklara karşı koruyucu etkilere sahip vitaminler, karotenoidler ve flavonoidler dahil çok sayıda fizyolojik olarak aktif bileşen içerir [10 , 11 ] .

    Birçok çalışma BC'nin antioksidatif etkiler ürettiğini bildirmiştir. BC'den gelen antosiyaninler, Nrf2 aracılı antioksidan mekanizmalar yoluyla oksidatif stresi ortadan kaldırır [ 12 ]. Ek olarak, BC ekstraktı sitoprotektif ve antiinflamatuar özelliklere sahiptir [ 13 ]. Ayrıca BC böbrek taşlarına karşı da koruma sağlar [ 14 ]. Ancak BC'nin metabolik bozukluğu olan kişilerde terapötik etkileri bildirilmemiştir. Bu nedenle, bu çalışma BC ekstraktının sıçanlarda yüksek fruktoz diyetinin neden olduğu metabolik sendrom üzerindeki etkisini belirlemek için tasarlandı.

    Şuraya git: 2. Yöntemler ve Malzemeler
    2.1. Bitki Materyali ve BC Ekstraktının Hazırlanması
    BC, Gukmin Çiftliğinden (Jeongeup, Kore) satın alındı. Bir kupon örneği (no. HBF191), Wonkwang Üniversitesi (Kore) Profesyonel Doğu Tıbbı Enstitüsü Herbaryumuna bırakıldı. BC (400 g), 3 L distile su ile 100°C'de 2 saat kaynatıldı. Ortaya çıkan ekstrakt Whatman No. 3 filtre kağıdından süzüldü ve 990 xg'de 20 dakika boyunca 4°C'de santrifüjlendi. Ortaya çıkan süpernatan, döner bir buharlaştırıcı kullanılarak konsantre edildi, ardından elde edilen ekstrakt (63,19 g), bir dondurarak kurutucu kullanılarak liyofilize edildi ve gerekene kadar -70°C'de saklandı.

    2.2. Hayvan Deneyleri ve Diyet
    Tüm deneysel prosedürler, Laboratuar Hayvanlarının Bakımı ve Kullanımı Ulusal Sağlık Enstitüsü Kılavuzuna uygun olarak gerçekleştirildi ve Wonkwang Üniversitesi Tıp Bilimi Kurumsal Hayvan Bakımı ve Kullanımı Komitesi tarafından onaylandı (onay numarası: WKU 14-50). Altı haftalık erkek Sprague-Dawley (SD) sıçanları, Samtako'dan (Osan, Kore) alındı ​​ve sıcaklık (23°C), nem (%50-60) ve aydınlık/karanlık döngülerinin otomatik olarak korunduğu bir odada tutuldu. (her biri 12 saat) deneyler boyunca. 1 haftalık iklimlendirmeden sonra sıçanlar rastgele 4 gruba ayrıldı (grup başına 10 sıçan). Kontrol grubu (Devam) ise düzenli diyetle beslendi. Yüksek fruktozlu (HF) diyet grubu %60 fruktozlu diyetle beslendi (Research Diet, ABD). Düşük doz BC grubu, 4 hafta boyunca Sonde tarafından ağızdan uygulanan 100 mg/kg/gün BC ile %60 fruktoz diyetiyle beslendi. Yüksek doz BC grubu, 4 hafta boyunca Sonde tarafından ağızdan uygulanan 300 mg/kg/gün BC ile %60 fruktoz diyetiyle beslendi. Normal diyet %50 nişasta, %21 protein, %4 yağ ve standart bir vitamin ve mineral karışımından oluşuyordu. Yüksek fruktozlu diyet %60 fruktoz, %20 protein, %10 yağ ve standart bir vitamin ve mineral karışımından oluşuyordu.

    2.3. Kan Basıncının Ölçülmesi
    Sistolik kan basıncı (SBP), invaziv olmayan kuyruk manşet pletismografisi kullanılarak belirlendi ve otomatik bir sfigmograf (MK2000; Muromachi Kikai, Tokyo, Japonya) ile kaydedildi. SKB haftada bir kez ölçüldü. Her ölçüm oturumu sırasında en az 10 SBP tespiti yapıldı. Değerler 8 ölçümün ortalama ± SEM'si olarak sunulmuştur.

    2.4. Oral Glikoz Toleransının Tahmini
    8 haftalık tedaviden sonra 2 gün arayla iki oral glukoz tolerans testi (OGTT) yapıldı. Kısaca, bazal kan şekeri konsantrasyonları 10-12 saatlik gecelik açlıktan sonra ölçüldü ve ardından glikoz (2 g/kg vücut ağırlığı) hemen oral sondayla uygulandı. Kuyruk veninden kan örnekleri glikoz uygulamasından 30, 60, 90 ve 120 dakika sonra toplandı.

    2.5. Kan ve Doku Örneklemesi
    Deneylerin sonunda torasik aort ve kas ayrıldı, soğuk salinle durulandı ve donduruldu. Pıhtılaşmış kan örneklerinden plazma, 3.000 rpm'de 15 dakika süreyle 4°C'de santrifüj edilerek elde edildi ve -80°C'de donduruldu.

    2.6. Kan Parametreleri
    Plazmadaki trigliserit seviyeleri ticari kitler (AM 157S-K, ASAN, Kore) kullanılarak ölçüldü. Plazmadaki HDL, toplam kolesterol ve düşük yoğunluklu lipoprotein (LDL) seviyeleri, HDL ve LDL tahlil kitleri (E2HL-100, Bio Assay Systems, Almanya) kullanılarak ölçüldü. Plazmadaki insülin seviyeleri ticari kitler (80-INSRT-E01, ALPCO, UK) kullanılarak ölçüldü. Plazmadaki C-reaktif protein (CRP) seviyeleri ticari kitler (557825, BD Biosciences, Amerika) kullanılarak ölçüldü. Plazmadaki leptin seviyeleri ticari kitler (ab100773, Abcam, UK) kullanılarak ölçüldü. Plazmadaki T-Bill ve BUN seviyeleri ticari kitler (77184, Arkray, Japonya) kullanılarak ölçüldü.

    2.7. Aortun Hazırlanması ve Vasküler Reaktivitenin Ölçülmesi
    Torasik aort her sıçandan hızlı ve dikkatli bir şekilde toplandı ve soğuk Kreb çözeltisine (118 mM NaCl, 4,7 mM KCl, 1,1 mM MgS04, 1,2 mM KH2P04, 1,5 mM CaCl, 25 mM NaHC03 , 10 mM glikoz ) yerleştirildi . ve pH 7.4). Her torasik aorttan bağ dokusu ve yağ çıkarıldı. Her torasik aort yaklaşık 3 mm uzunluğunda halkalar halinde kesildi. Diseksiyon işlemi sırasında endotelin kazara hasar görmemesine dikkat edildi. Torasik aort halkaları, lümene yerleştirilen ve %95 O2 ve %5 C02 ile havalandırılan 2 adet L-şekilli paslanmaz çelik tel vasıtasıyla 37°C'de Kreb solüsyonu içeren bir doku banyosuna asıldı.. Halkaların izometrik kuvvetleri, Model 7E yalan makinesi kayıt sistemine (Grass Technologies, Quincy, MA, ABD) bağlı bir Grass FT 03 kuvvet yer değiştirme dönüştürücüsü kullanılarak ölçüldü. Torasik aort halkalarındaki 1 g'lik pasif gerilmenin, fenilefrine (10 −6  M) maksimum yanıt için optimal gerilim olduğu belirlendi . Her 10 dakikada bir Kreb çözeltisi değiştirilerek preparatların yaklaşık 1 saat boyunca dengelenmesine izin verildi.  Torasik aort halkalarında asetilkolinin (ACh, 10 −9 –10 −6  M) ve sodyum nitroprussidin (SNP, 10 −10 –10 −5 M) gevşetici etkileri araştırıldı.

    2.8. Sıçan Aortu ve Kasında Western Blot Analizi
    Torasik aort ve kas homojenatları, 250 mM sakaroz, 1 mM EDTA, 0.1 mM fenilmetilsülfonil florür ve 20 mM potasyum fosfat tamponu (pH 7.6) içeren buz soğukluğunda tampon içinde hazırlandı. Homojenatlar, 4°C'de 10 dakika boyunca 8.000 rpm'de santrifüjlendi; ardından elde edilen süpernatanlar, protein analizi için bir sitosolik fraksiyon üretmek üzere 4°C'de 5 dakika boyunca 13.000 rpm'de santrifüjlendi. Geri kazanılan proteinler, %10 SDS-poliakrilamid jel elektroforezi ile ayrıldı ve nitroselüloz membranlara aktarıldı; bunlar, 1 saat boyunca %0,05 Tween 20-Tris tamponlu salin (TBS-T) içerisinde %5 sığır serum albümini (BSA) tozu ile bloke edildi. . ICAM-1, VCAM-1, E-selektin, eNOS, ET-1 (aortta), AMP ile aktifleştirilen protein kinaza (AMPK), p-AMPK'ye karşı spesifik birincil antikorlar, ve insülin reseptörü substrat-1 (IRS-1) (kas içinde) Santa Cruz Bioteknoloji, Inc.'den (Santa Cruz, CA, ABD) satın alınmıştır. Nitroselüloz membranlar, gece boyunca 4°C'de protein antikorları ile inkübe edildi. Lekeler birkaç kez TBS-T ile yıkandı ve yaban turpu peroksidaz konjuge ikincil antikorla 1 saat boyunca inkübe edildi; ardından immünoreaktif bantlar, geliştirilmiş bir kemilüminesans sistemi (Amersham, Buchinghamshire, UK) kullanılarak görselleştirildi. Bantlar, bir Chemi-doc Image Analizörü (Bio-Rad, Hercules, CA, ABD) kullanılarak dansitometrik olarak analiz edildi. Lekeler birkaç kez TBS-T ile yıkandı ve yaban turpu peroksidaz konjuge ikincil antikorla 1 saat boyunca inkübe edildi; ardından immünoreaktif bantlar, geliştirilmiş bir kemilüminesans sistemi (Amersham, Buchinghamshire, UK) kullanılarak görselleştirildi. Bantlar, bir Chemi-doc Image Analizörü (Bio-Rad, Hercules, CA, ABD) kullanılarak dansitometrik olarak analiz edildi. Lekeler birkaç kez TBS-T ile yıkandı ve yaban turpu peroksidaz konjuge ikincil antikorla 1 saat boyunca inkübe edildi; ardından immünoreaktif bantlar, geliştirilmiş bir kemilüminesans sistemi (Amersham, Buchinghamshire, UK) kullanılarak görselleştirildi. Bantlar, bir Chemi-doc Image Analizörü (Bio-Rad, Hercules, CA, ABD) kullanılarak dansitometrik olarak analiz edildi.

    2.9. Aort, Epididimal Yağ ve Karaciğerin Hematoksilen ve Eozin (H&E) ve Yağ Kırmızısı O Boyaması
    Her gruptan rastgele 5 denekten alınan torasik aort dokusu, 0,01 M fosfat tamponlu salinde (PBS) %10 (h/h) formalinde 2 gün süreyle sabitlendi ve formalin çözeltisi, kan izlerini gidermek için her gün değiştirildi. Aort dokusu numuneleri dehidre edildi ve parafine gömüldü, bölümlere ayrıldı (6  μ m) ve H & E ile boyandı. Epididimal yağ (her gruptan rastgele 5 denekten) ve karaciğer dokusu (her gruptan 5 rastgele denekten) örnekleri alındı. 4°C'de 48 saat boyunca %4 paraformaldehit içerisinde sabitlendi ve 2 gün boyunca %30 sakkaroz ile inkübe edildi. Her bir yağ ve karaciğer örneği, OCT bileşiğine (Tissue-Tek, Sakura Finetek, Torrance, CA, ABD) gömüldü, sıvı nitrojen içinde donduruldu ve -80°C'de saklandı. Dondurulmuş kesitler Shandon Cryotome SME (Thermo Electron Corporation, Pittsburg, PA, ABD) ile kesildi ve polietilen üzerine monte edildi.l -lisin kaplı slaytlar. Epididimal yağ bölümleri H&E ile, karaciğer bölümleri ise Oil Red O ile boyandı. Kantitatif histopatolojik karşılaştırmalar için her bölüm Axiovision 4 Imaging/Archiving yazılımı kullanılarak analiz edildi.

    2.10. Torasik Aort Dokusunun İmmünohistokimyası
    İmmünohistokimyasal boyamadan önce parafindeki doku kesitleri poli- l üzerine monte edildi.-lisin kaplı slaytlar (Fisher Scientific, Pittsburgh, PA, ABD). Her slayttaki doku, etiketli streptavidin-biyotin (LAB-SA) yöntemiyle Invitrogen HISOTO-STAIN-SP kitleri kullanılarak immün boyamaya tabi tutuldu. Antijen alımından sonra slaytlar, endojen peroksidaz aktivitesini bloke etmek için oda sıcaklığında 10 dakika boyunca %3 hidrojen peroksit içerisine daldırıldı ve PBS ile durulandı. Daha sonra slaytlar, oda sıcaklığında 10 dakika boyunca %10 immün olmayan keçi serumu ile inkübe edildi ve ICAM-1, VCAM-1, ET-1 ve eNOS'a (1: 200; Santa Cruz, CA, ABD) karşı primer antikorlarla inkübe edildi. 4°C'de gece boyunca nemlendirilmiş odalar. Daha sonra slaytlar, oda sıcaklığında 20 dakika boyunca biyotinlenmiş ikincil antikorlarla inkübe edildi, ardından oda sıcaklığında 20 dakika boyunca yaban turpu peroksidaz konjuge streptavidin ile inkübe edildi. Peroksidaz aktivitesi 3 kullanılarak görselleştirildi, Hematoksilen karşı boyamalı 3′-diaminobenzidin (DAB; Novex, CA) substrat-kromojen sistemi (Zymed, CA, ABD). Kantitatif analiz için, rastgele seçilen 10-20 alanın ortalama puanı, NIH Image Analysis Software, ImageJ (NIH, Bethesda, MD, ABD) kullanılarak hesaplandı.

    2.11. İstatistiksel analiz
    Tüm deneyler en az 3 kez tekrarlandı. Sonuçlar ortalama ± SD veya ortalama ± SEM olarak ifade edilir. Veriler Sigmaplot 10.0 yazılımı kullanılarak analiz edildi. Gruplar arasındaki anlamlı farkları belirlemek için Öğrenci t testi kullanıldı. P < 0.05 sonuçları istatistiksel olarak anlamlı kabul edildi.

    Şuraya git: 3. Sonuçlar
    3.1. BC'nin Vücut Ağırlığı ve Doku Ağırlığı Üzerine Etkileri
    Deney periyodu sırasında tüm gruplarda vücut ağırlığında önemli artışlar görüldü. HF diyet grubunun vücut ağırlığı, kontrol grubununkinden önemli ölçüde farklı değildi. Ancak BC1 ve BC2 grupları, deneyin son haftasında HF diyeti grubuyla karşılaştırıldığında vücut ağırlığında önemli ölçüde azalma gösterdi.

    Kontrol grubu ile karşılaştırıldığında, HF diyet grubu karaciğer ağırlığında, BW yüzdesi olarak karaciğer ağırlığında, epididimal yağ yastığı ağırlığında ve BW yüzdesi olarak epididimal yağ yastığı ağırlığında önemli ölçüde artış gösterdi. Bununla birlikte, BC1 ve BC2 grupları, karaciğer ağırlığında, BW yüzdesi olarak karaciğer ağırlığında, epididimal yağ yastığı ağırlığında ve BW yüzdesi olarak epididimal yağ yastığı ağırlığında önemli ölçüde azalma gösterdi (tablo 1).

    tablo 1
    BC'nin vücut ağırlığı, karaciğer ağırlığı, BW'nin karaciğer ağırlığı yüzdesi, epididimal yağ yastığı ağırlığı ve BW'nin epididimal yağ yastığı ağırlığı yüzdesi üzerindeki etkileri.
    Vücut ağırlığı (g)        
     Başlangıç 227,62 ± 1,96 221,75 ± 2,64 233,79 ± 1,99 224,27 ± 2,31
     Final 466,15 ± 10,75 455,14±8,15 427,14 ± 10,97 # 419,73 ± 6,6 #
    Karaciğer ağırlığı (g) 10,9 ± 0,52 13,2 ± 0,76 ∗ 11,18 ± 0,21 # 10,8 ± 0,23 ##
    Karaciğer ağırlığının %'si BW 2,49 ± 0,07 2,8 ± 0,03 ∗ 2,52 ± 0,03 # 2,54 ± 0,04 #
    Epididimal yağ yastıklarının ağırlığı (g) 6,64 ± 0,4 7,47 ± 0,46 ∗ 6,42 ± 0,55 # 5,15 ± 0,42 #
    Epididimal yağ yastıkçıklarının BW ağırlığının yüzdesi 1,45 ± 0,05 1,74 ± 0,06 ∗ 1,38 ± 0,14 # 1,19 ± 0,08 #
    Ayrı bir pencerede aç
    Değerler ortalama ± SE ( n = 10) olarak ifade edildi . ∗ P < 0,05'e karşı Devamlı; # P < 0,05 ve ## P < 0,01, HF'ye karşı. BW: vücut ağırlığı; Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün. 3.2. BC'nin Plazma Parametreleri Üzerindeki Etkileri


    HF diyet grubu, kontrol grubuyla karşılaştırıldığında CRP, T-Bil ve insülin düzeylerinde anlamlı artış gösterdi. Bununla birlikte, BC2 grubu, HF diyet grubuyla karşılaştırıldığında CRP, T-Bil ve insülinde önemli ölçüde azalma gösterdi. HF diyet grubu, kontrol grubuyla karşılaştırıldığında önemli ölçüde azalmış leptin gösterdi. BC2 grubu, HF diyet grubuyla karşılaştırıldığında önemli ölçüde artmış leptin gösterdi (Tablo 2). Tablo 2


    BC'nin CRP, T-Bil, leptin ve insülin üzerindeki etkileri.
    CRP (ng/mL) 195,62 ± 1,32 208,82 ± 5,6 ∗ 194,1 ± 2,52 193,67 ± 2,39 #

    T-Bil (mg/dL) 0,6 ± 0,03 0,72 ± 0,05 ∗ 0,63 ± 0,04 0,57 ± 0,02 #

    Leptin (pg/dL) 0,62 ± 0,03 0,45 ± 0,03 ∗ 0,53 ± 0,01 0,83 ± 0,1 ##

    İnsülin (mg/dL) 0,64 ± 0,03 1,15 ± 0,19 ∗ 0,64 ± 0,06 # 0,62 ± 0,05 #
    Ayrı bir pencerede aç
    Değerler ortalama ± SE ( n = 10) olarak ifade edildi . ∗ P < 0,05'e karşı Cont; # P < 0,05 ve ## P < 0,01, HF'ye karşı. CRP: C-reaktif protein; T-Bil: toplam bilirubin; Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    3.3. BC'nin Oral Glikoz Toleransı ve Kasta IRS-1 ve p-AMPK Ekspresyonu Üzerine Etkileri
    İnsülin direncini ölçmek için her sıçan OGTT'ye tabi tutuldu. HF diyet grubu, glikoz uygulamasından 90 ve 120 dakika sonra kan glikoz içeriğinde önemli ölçüde artış gösterdi. Ancak BC2 grubunun kan şekeri içeriği, glikoz uygulamasından 90 ve 120 dakika sonra HF diyet grubuna kıyasla önemli ölçüde azaldı.

    HF diyet grubunun IRS-1 ve p-AMPK protein ekspresyon seviyeleri, kontrol grubuyla karşılaştırıldığında önemli ölçüde azaldı. Bununla birlikte, BC1 ve BC2 gruplarındaki kas dokusundaki IRS-1 ve p-AMPK protein ekspresyon seviyeleri, HF diyet grubuna kıyasla azaldı (Şekil 1).
    Bir resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.001.jpg
    Şekil 1
    BC'nin oral glukoz tolerans testi (a) ve kastaki (b) IRS-1 ve p-AMPK ekspresyonu üzerindeki etkileri. Değerler ortalama ± SE ( n = 10) olarak ifade edildi . ∗ P < 0,05'e karşı Cont; # P < 0,05, HF'ye karşı. IRS-1 ve p-AMPK protein seviyelerinin temsili western lekeleri gösterilmiştir ( n = 4). IRS-1: insülin reseptörü substratı 1; Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    3.4. BC'nin Epididimal Yağ Yastıklarının Morfolojisi Üzerine Etkisi
    HF diyeti bu çalışmada yağ hipertrofisine neden oldu. Bununla birlikte, BC1 ve BC2 gruplarının adipositleri, HF diyet grubuyla karşılaştırıldığında önemli ölçüde azalmış hipertrofi gösterdi (şekil 2).

    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.002.jpg
    şekil 2
    BC'nin epididimal yağ yastıkçığı morfolojisi üzerindeki etkileri. Kontrol diyeti ve HF diyeti uygulanan SD sıçanlarının epididimal yağ yastıklarındaki temsili mikroskobik fotoğraflar hematoksilen ve eozin ile boyandı. Değerler ortalama ± SE ( n = 5) olarak ifade edildi . ∗∗ P < 0,01'e karşı Cont; ## P < 0,01, HF'ye karşı. Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün. 3.5. BC'nin Hepatik Steatoz Üzerine Etkisi


    Karaciğerdeki yağ birikimini araştırmak için Oil Red O ile boyanmış dondurulmuş karaciğer kesitleri hazırladık. HF diyeti gruplarında lipit damlacıkları tespit edildi. Bununla birlikte, BC1 ve BC2 gruplarında HF diyet grubuyla karşılaştırıldığında önemli ölçüde daha az lipit damlacığı sayıldı (Figür 3).

    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.003.jpg
    Figür 3
    BC'nin karaciğer morfolojisi üzerine etkileri. Kontrol diyeti ve HF diyeti uygulanan SD sıçanlarının karaciğerindeki temsili mikroskobik fotoğraflar, Yağ kırmızısı O ( n = 5) ile boyandı . Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün. 3.6. BC'nin Lipid Metabolizması Biyobelirteç Düzeyleri Üzerine Etkisi


    Lipid metabolizmasının biyobelirteçleri olarak toplam kolesterol, trigliserit, LDL ve HDL plazma seviyeleri ölçüldü. HF diyet grubunun toplam kolesterol, trigliserit ve LDL düzeyleri, kontrol grubuyla karşılaştırıldığında önemli ölçüde arttı. Ancak BC1 ve BC2 gruplarının toplam kolesterol, trigliserit ve LDL düzeyleri, HF grubuna kıyasla önemli ölçüde azaldı. Ne HF grubunun, ne de BC grubunun HDL düzeyinde anlamlı bir fark yoktu (Tablo 3). Tablo 3


    8 hafta boyunca HF ve/veya BC ile beslenen SD sıçanlarındaki lipit profili.
    T-Cho (mg/dL) 55,36 ± 1,65 73,66 ± 3,62 ∗∗ 59,93 ± 3,07 # 58,36 ± 3,76 #
    TG (mg/dL) 98,13 ± 13,43 229,66 ± 15,29 ∗∗ 137,32 ± 14,42 ## 109,38 ± 13,36 ##
    LDL-c (mg/dL) 31,37 ± 3,73 46,76 ± 8,85 ∗ 33,32 ± 4,97 # 34,35 ± 2,63 #
    HDL-k (mg/dL) 30,37 ± 4,8 27,49 ± 5,72 32,64 ± 5,2 35,1 ± 7,62
    Ayrı bir pencerede aç
    Değerler ortalama ± SE ( n = 10) olarak ifade edildi . ∗ P < 0,05 ve ∗∗ P < 0,01'e karşı Cont; # P < 0,05 ve ## P < 0,01, HF'ye karşı. T-Cho: toplam kolesterol; TG: trigliserit; LDL-c: düşük yoğunluklu lipoprotein; HDL-c: yüksek yoğunluklu lipoprotein; Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    3.7. BC'nin Sistolik Kan Basıncı ve Damar Gerginliğine Etkisi
    Deneysel beslenme periyodunun başlangıcında sistolik kan basıncı kuyruk manşet tekniği ile ölçüldü. 4 hafta sonra, HF diyet grubunun sistolik kan basıncı, kontrol grubuna göre anlamlı derecede yüksekti. BC1 grubunun sistolik kan basıncı, HF diyet grubuna göre anlamlı derecede düşüktü. BC2 grubunun sistolik kan basıncı, HF diyet grubuna göre anlamlı derecede düşüktü.

     Torasik aortta SNP'ye (1 × 10⁻¹⁰ ila 1 × 10⁻⁷ M  ) ve ACh'ye (1 × 10⁻⁹ ila 1 × 10⁻⁶ M ) vasküler yanıtlar ölçüldü. ACh'nin neden olduğu torasik aort halkalarındaki gevşeme, HF diyet grubunda diğer gruplarla karşılaştırıldığında önemli ölçüde bozulmuştur. Torasik aort halkalarında SNP'nin neden olduğu gevşeme, diğer gruplarla karşılaştırıldığında HF diyet grubunda önemli ölçüde bozulmuştur (Şekil 4).
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.004.jpg
    Şekil 4
    BC'nin sistolik kan basıncı (a) üzerindeki etkileri, torasik aorttaki vasküler ton, BC'nin torasik aorttaki sodyum nitroprussid kaynaklı kasılma üzerindeki etkisi (b) ve BC'nin torasik aorttaki asetilkolin kaynaklı gevşeme üzerindeki etkisi (c). Değerler ortalama ± SE ( n = 10) olarak ifade edildi . ∗ P < 0,05 ve ∗∗ P < 0,01'e karşı Devamlı; # P < 0,05 ve ## P < 0,01, HF'ye karşı. SNP: sodyum nitroprussid; ACh: asetilkolin; Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    3.8. BC'nin Aort Morfolojisi Üzerine Etkisi
    HF diyet grubunun tunika intima-medya tabakası, kontrol grubuyla karşılaştırıldığında önemli ölçüde artan kalınlık gösterdi. Bununla birlikte, BC1 ve BC2 gruplarının tunika intima-medya tabakası, HF diyet grubuna kıyasla önemli ölçüde azalmış kalınlık gösterdi (Şekil 5).

    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.005.jpg
    Şekil 5
    BC'nin aort morfolojisi üzerine etkileri. Kontrol diyeti ve HF diyeti uygulanan SD sıçanlarının aortundaki temsili mikroskobik fotoğraflar hematoksilen ve eozin ile boyandı. Değerler ortalama ± SE ( n = 5) olarak ifade edildi . ∗∗ P < 0,01'e karşı Devamlı; # P < 0,05, HF'ye karşı. Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    3.9. BC'nin Aort Dokusunda Yapışma Molekülleri, eNOS ve ET-1'in İfade Düzeyleri Üzerindeki Etkileri
    Aort dokusundaki yapışma moleküllerinin (VCAM-1, ICAM-1 ve E-selektin), ET-1 ve eNOS'un protein ekspresyon seviyeleri western blotlama ile belirlendi. Adezyon moleküllerinin ve ET-1'in protein seviyeleri, HF diyet grubunda kontrol grubuna kıyasla arttı. Ancak BC1 ve BC2 grupları, HF diyet grubuyla karşılaştırıldığında adezyon moleküllerinin ve ET-1'in protein seviyelerinin azaldığını gösterdi. Ayrıca HF diyet grubunda eNOS protein ekspresyonu kontrol grubuyla karşılaştırıldığında azaldı. Ancak BC1 ve BC2 grupları, HF grubuyla karşılaştırıldığında eNOS protein ekspresyonunun arttığını gösterdi (Şekil 6).

    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ECAM2015-385976.006.jpg
    Şekil 6
    BC'nin aorttaki adezyon molekülleri, ET-1 ve eNOS'un ekspresyonu üzerindeki etkisi. Adezyon moleküllerinin temsili western lekeleri, eNOS ve ET-1 protein seviyeleri gösterilmiştir ( n = 5). Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün. 3.10. BC'nin Aort Dokularındaki Yapışma Molekülleri, eNOS ve ET-1'in İmmünoreaktivitesi Üzerine Etkileri


    Aort duvarında ET-1, ICAM-1, VCAM-1 ve e-NOS ekspresyonunu değerlendirmek için immünohistokimya kullanıldı. ET-1, ICAM-1 ve VCAM-1 protein ekspresyon seviyeleri, HF diyet grubunda kontrol grubuyla karşılaştırıldığında arttı. Ancak BC1 ve BC2 gruplarının ET-1, ICAM-1 ve VCAM-1 protein ekspresyon düzeyleri, HF diyet grubuna kıyasla azaldı. eNOS ekspresyonu HF diyet grubunda kontrol grubuyla karşılaştırıldığında azaldı. Bununla birlikte, BC1 ve BC2 ile tedavi edilen gruplar, HF diyet grubuyla karşılaştırıldığında eNOS ekspresyonunun arttığını gösterdi (Şekil 7).

    Bir resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: ECAM2015-385976.007.jpg
    Şekil 7
    BC'nin aort dokularında ET-1 (a), ICAM-1 (b), VCAM-1 (c) ve eNOS (d) immünoreaktivitesi üzerindeki etkileri. Değerler ortalama ± SE ( n = 5) olarak ifade edildi . ∗∗ P < 0,01'e karşı Devamlı; # P < 0,05, HF'ye karşı. Devam: kontrol; HF: yüksek fruktoz; BC1: frenk üzümü 100 mg/kg/gün; BC2: Frenk üzümü 300 mg/kg/gün.

    Şuraya git: 4. Tartışma
    Bu çalışmanın sonuçları, HF diyetinin, artan plazma trigliserit ve LDL düzeylerinden kaynaklanan epididimal yağ yastığı ağırlığının artmasıyla birlikte metabolik sendromu tetiklediğini göstermektedir. BC ile tedavi epididimal yağ yastığı ağırlığını, trigliserit seviyelerini ve LDL seviyelerini düşürürken, lipit metabolizmasını artıran HDL seviyelerini yükseltti. Böylece BC, trigliseritlerin ve LDL'nin plazma seviyelerini azaltarak lipid metabolizmasını geliştirir. HF diyetine yanıt olarak epididimal yağ yastığı ağırlığı artmasına rağmen, kontrol diyeti ve HF diyet gruplarının vücut ağırlığı benzerdi [ 15 ]. HF'nin hepatik lipaz aktivitesini ve epididimal yağ hipertrofisini arttırdığı gösterilmiştir .] Artan vücut ağırlığını ölçmeye yönelik deneyler, bu çalışmada kullanılan 8 haftalık süreden daha uzun olmalıdır [ 17 ]. BC, HF diyetiyle beslenen sıçanlarda obeziteyi azaltır çünkü BC, bu çalışmada HF diyetinin neden olduğu vücut ağırlığındaki artışı önemli ölçüde azalttı. Ek olarak BC, insülin ve leptin düzeylerini baskılamıştır [ 18 , 19 ].

    HF glukoz toleransını bozduğu ve obeziteyi, dislipidemiyi ve yağlı karaciğeri indüklediği için bu çalışma karaciğer ve kasta AMPK ekspresyonuna odaklanmıştır [ 20 ]. HF, IRS-1'in ifadesini azalttı. IRS-1 eksikliği insülin direncine neden olur. Ek olarak IRS-1, karaciğer ve kastaki pankreatik β hücrelerinden insülin salgılanmasında çok önemli bir rol oynar [ 21 ]. BC grubu, HF grubuna kıyasla IRS-1 ifadesinin azaldığını gösterdi.

    Bu çalışmada HF, dolaşımdaki inflamatuar belirteç CRP düzeylerini artırdı. Artmış CRP, koroner arter hastalığı için bağımsız bir risk faktörüdür [ 22 ]. HF diyetinin neden olduğu değişen lipit seviyeleri aort lezyonlarıyla ilişkilendirildi. Histolojik analiz, HF diyeti uygulanan sıçanların aort kesitlerinde endotel katmanlarının daha pürüzlü olduğunu gösterdi; bu durum, ateroskleroz gelişiminin artmasına yönelik bir eğilimle ilişkilendirildi. Torasik aortun intima-media kalınlığının koroner arter hastalığının prognozu ve derecesi ile korele olduğu gösterilmiştir [ 23 ]. BC tedavisi, HF diyeti olan sıçanların aort bölümlerinde pürüzsüz ve yumuşak intima endotel katmanlarını korudu ve intima-medya kalınlığını azalttı.

    Endotel disfonksiyonu hipertansiyon, vasküler inflamasyon, diğer kardiyovasküler hastalıklar ve metabolik sendromda önemli bir rol oynar [ 24 , 25 ]. Bu deneysel modelde, ET-1'in ve ICAM-1 ve VCAM-1 gibi indüklenebilir adezyon moleküllerinin arteriyel duvardaki ekspresyonu, ateroskleroz gelişiminde önemli bir olayı temsil ediyordu. BC, torasik aortta ET-1, ICAM-1, VCAM-1 ve E-selektin ekspresyonunun aşağı regülasyonu yoluyla vasküler inflamasyonu iyileştirdi. Çeşitli çalışmalar , kan basıncının ve endotel fonksiyonunun azalmasının, artan eNOS reaktivitesiyle ilişkili olduğunu ve bunun da güçlü bir vazodilatör olan NO üretiminin artmasına neden olduğunu göstermiştir .] Bu çalışmada BC, aorttaki eNOS seviyelerini yükseltti ve HF diyetinin neden olduğu endotel bağımlı vazorelaksasyon bozulmasını düzeltti. Bu sonuçlar, BC'nin hipotansif etkisine endotel bağımlı NO/cGMP sinyallemesinin aracılık ettiğini göstermektedir. Histolojik çalışma, BC'nin ateroskleroz süreçleriyle uyumlu olarak vasküler inflamasyonu baskıladığını ortaya çıkardı. Aslında endotel disfonksiyonu başlangıçta ACh ve bradikinin gibi spesifik uyaranlara yanıt olarak bozulmuş vazodilatasyon olarak tanımlandı; bu nedenle endotel fonksiyonundaki iyileşmenin lipid homeostazisini düzenlediği öngörülmektedir [ 28 ].

    Şuraya git: 5. Sonuç
    BC, toplam kolesterol, trigliseritler ve LDL dahil olmak üzere dislipidemi biyobelirteçlerinin azalmış plazma düzeylerini iyileştirdi. BC, SNP ve ACh'nin neden olduğu gevşemeyi arttırdı ve torasik aortta adezyon moleküllerinin ekspresyonunu baskıladı, sistolik kan basıncını düşürdü ve C-reaktif protein seviyelerini düşürdü. Ek olarak BC, insülin salınımını azaltarak, glikoz toleransını iyileştirerek ve iskelet kası dokusunda IRS-1 ekspresyonunu iyileştirerek insülin sinyalini geri yükleyerek insülin direncini iyileştirdi. Ek olarak BC, leptin ve adiposit boyutu gibi obezite parametrelerini de iyileştirmiştir. Bu sonuçlar, BC'nin, HF'nin neden olduğu metabolik sendromu olan sıçanlarda dislipidemiyi, hipertansiyonu, insülin direncini ve obeziteyi iyileştirdiğini göstermektedir. Birlikte ele alındığında, bu çalışmanın sonuçları BC'nin metabolik sendrom için yeni bir terapötik yaklaşım olarak kullanılabileceğini göstermektedir.

    Şuraya git: Teşekkür
    Bu çalışma, Kore hükümeti (MSIP) (2008-0062484) (NRF-2014R1A2A2A01005101) tarafından finanse edilen Kore Ulusal Araştırma Vakfı (NRF) hibesi tarafından desteklenmiştir.

    Şuraya git: Çıkar Çatışması
    Yazarlar bu makalenin yayınlanmasıyla ilgili olarak herhangi bir çıkar çatışması olmadığını beyan ederler.

    Şuraya git: Referanslar

    1. El-Bassossy HM, Shaltout HA Allopurinol, yüksek fruktoz, yüksek tuz ve yüksek yağın neden olduğu metabolik sendrom modelinde hipertansiyonu ve proteinüriyi hafifletir. Çeviri Araştırması . 2015; 165 (5):621–630. doi: 10.1016/j.trsl.2014.11.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    2. Yetişkinlerde yüksek kan kolesterolünün tespiti, değerlendirilmesi ve tedavisine ilişkin Ulusal Kolesterol Eğitim Programı (NCEP) uzman panelinin üçüncü raporunun yönetici özeti (Yetişkin Tedavi Paneli III) Amerikan Tabipler Birliği Dergisi . 2001; 285 :2486–2497. [ PubMed ] [ Google Akademik ]
    3. Grundy SM, Brewer HB, Jr., Cleeman JI, Smith SC, Jr., Lenfant C. Metabolik sendromun tanımı: Tanımla ilgili bilimsel konulara ilişkin Ulusal Kalp, Akciğer ve Kan Enstitüsü/Amerikan Kalp Birliği konferansının raporu . Dolaşım . 2004; 109 (3):433–438. doi: 10.1161/01.cir.0000111245.75752.c6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    4. Kumamoto R., Uto H., Oda K., ve diğerleri. Diyetteki fruktoz, sıçanlarda dietilnitrosaminin uygulanmasıyla indüklenen kanser öncesi hepatositlerin görülme sıklığını arttırır. Avrupa Tıbbi Araştırma Dergisi . 2013; 18 (1, madde 54) doi: 10.1186/2047-783x-18-54. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    5. Havel PJ Diyet fruktozu: Enerji homeostazisinin ve lipit/karbonhidrat metabolizmasının düzensizliğine yönelik çıkarımlar. Beslenme İncelemeleri . 2005; 63 (5):133–137. doi: 10.1301/nr.2005.mayıs.133-157. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    6. Basciano H., Federico L., Adeli K. Fruktoz, insülin direnci ve metabolik dislipidemi. Beslenme ve Metabolizma . 2005; 2, madde 5 doi: 10.1186/1743-7075-2-5. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    7. Ishimoto T., Lanaspa MA, Le MT, ve diğerleri. Fruktokinaz C ve A izoformlarının farelerde fruktozun neden olduğu metabolik sendrom üzerindeki karşıt etkileri. Amerika Birleşik Devletleri Ulusal Bilimler Akademisi Bildirileri . 2012; 109 (11):4320–4325. doi: 10.1073/pnas.1119908109. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    8. An BJ, Kim JH, Kwon OJ Omija ( Schizandra chinensis Baillon) ekstraktlarının biyolojik aktivitesi. Kore Uygulamalı Biyolojik Kimya Derneği Dergisi . 2007; 50 :198–203. [ Google Akademik ]
    9. Shin DB, Lee DW, Yang R., Kim JA Olgunlaşmış Narenciye kabuğu özlerinin antioksidan özellikleri ve flavonoid içerikleri. Gıda Bilimi ve Biyoteknoloji . 2006; 15 :357–362. [ Google Akademik ]
    10. Tilg H., Hotamışlıgil GS Alkolsüz yağlı karaciğer hastalığı: sitokin-adipokin etkileşimi ve insülin direncinin düzenlenmesi. Gastroenteroloji . 2006; 131 (3):934–945. doi: 10.1053/j.gastro.2006.05.054. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    11. Bishayee A., Mbimba T., Thoppil RJ, ve diğerleri. Antosiyanin açısından zengin siyah frenk üzümü ( Ribes nigrum L.) ekstraktı, sıçanlarda dietilnitrozaminin neden olduğu hepatoselüler karsinojeneze karşı kemopreventif etki sağlar. Beslenme Biyokimyası Dergisi . 2011; 22 (11):1035–1046. doi: 10.1016/j.jnutbio.2010.09.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    12. Thoppil RJ, Bhatia D., Barnes KF, ve diğerleri. Siyah frenk üzümü antosiyaninleri, hepatoselüler karsinomun bir sıçan modelinde Nrf2 aracılı antioksidan mekanizmalar yoluyla oksidatif stresi ortadan kaldırır. Güncel Kanser İlaç Hedefleri . 2012; 12 (9):1244–1257. [ PubMed ] [ Google Akademik ]
    13. Ambrozewicz E., Augustyniak A., Gęgotek A., Bielawska K., Skrzydlewska E. Oksidatif stres oluşumuna karşı siyah frenk üzümü koruması. Toksikoloji ve Çevre Sağlığı Dergisi Bölüm A: Güncel Sorunlar . 2013; 76 (23):1293–1306. doi: 10.1080/15287394.2013.850762. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    14. Keßler T., Jansen B., Hesse A. Frenk üzümü, kızılcık ve erik suyu tüketiminin böbrek taşı oluşumuyla ilişkili risk faktörleri üzerine etkisi. Avrupa Klinik Beslenme Dergisi . 2002; 56 (10):1020–1023. doi: 10.1038/sj.ejcn.1601442. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    15. Alberti KGMM, Eckel RH, Grundy SM, ve diğerleri. Metabolik sendromun uyumlaştırılması: uluslararası diyabet federasyonu görev gücünün epidemiyoloji ve önleme konusundaki ortak geçici beyanı; Ulusal kalp, akciğer ve kan enstitüsü; Amerikan kalp derneği; Dünya kalp federasyonu; Uluslararası ateroskleroz topluluğu; Ve obezite araştırmaları için uluslararası birlik. Dolaşım . 2009; 120 (16):1640–1645. doi: 10.1161/dolaşımaha.109.192644. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    16. Giriş M., Doğru-Abbasoğlu S., Kumral A., Olgaç V., Koçak-Toker N., Uysal M. Fruktoz kaynaklı insülinde karnosinin tek başına veya α-tokoferol ile kombine olarak hepatik steatoz ve oksidatif stres üzerine etkisi -dirençli sıçanlar. Fizyoloji ve Biyokimya Dergisi . 2014; 70 (2):385–395. doi: 10.1007/s13105-014-0314-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    17. Grundy SM, Cleeman JI, Daniels SR, ve diğerleri. Metabolik sendromun tanısı ve yönetimi: Amerikan Kalp Derneği/Ulusal Kalp, Akciğer ve Kan Enstitüsünün bilimsel beyanı. Kardiyolojide Güncel Görüş . 2006; 21 (1):1–6. doi: 10.1097/01.hco.0000200416.65370.a0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    18. İnsan hastalıklarında insülin direncinin GM Patofizyolojisi Reaven. Fizyolojik İncelemeler . 1995; 75 (3):473–486. [ PubMed ] [ Google Akademik ]
    19. Zhang Y., Proenca R., Maffei M., Barone M., Leopold L., Friedman JM Fare obez geninin ve bunun insan homologunun konumsal klonlaması. Doğa . 1994; 372 (6505):425–432. doi: 10.1038/372425a0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    20. Misra P., Chakrabarti R. AMP kinazın diyabetteki rolü. Hint Tıbbi Araştırma Dergisi . 2007; 125 (3):389–398. [ PubMed ] [ Google Akademik ]
    21. Clausen JO, Hansen T., Bjorbaek CS, ve diğerleri. İnsülin direnci: obezite ile insülin reseptörü substrat-1'in ortak bir varyantı arasındaki etkileşimler. Lancet . 1995; 346 (8972):397–402. doi: 10.1016/s0140-6736(95)92779-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    22. Danesh J., Muir J., Wong Y.-K., Ward M., Gallimore JR, Pepys MB Koroner kalp hastalığı ve akut faz proteinleri için risk faktörleri. Nüfusa dayalı bir çalışma. Avrupa Kalp Dergisi . 1999; 20 (13):954–959. doi: 10.1053/euhj.1998.1309. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    23. Tran LT, Yuen VG, McNeill JH Fruktozla beslenen sıçan: fruktozun neden olduğu insülin direnci ve hipertansiyon mekanizmaları üzerine bir inceleme. Moleküler ve Hücresel Biyokimya . 2009; 332 (1-2):145–159. doi: 10.1007/s11010-009-0184-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    24. Tziomalos K., Athyros VG, Karagiannis A., Mikhailidis DP Metabolik sendromda endotel disfonksiyonu: prevalans, patogenez ve yönetim. Beslenme, Metabolizma ve Kardiyovasküler Hastalıklar . 2010; 20 (2):140–146. doi: 10.1016/j.numecd.2009.08.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    25. Chun XZ, Xu X., Cui Y., ve diğerleri. Artan endotel nitrik oksit sentaz ekspresyonu, fruktozla tedavi edilen sıçanlarda hipertansiyonu ve hiperinsülinemiyi azaltır. Farmakoloji ve Deneysel Terapötikler Dergisi . 2009; 328 (2):610–620. doi: 10.1124/jpet.108.143396. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    26. Mahmoud MF, El-Nagar M., El-Bassossy HM Fruktozla beslenen sıçanlarda atorvastatinin vasküler reaktivite ve insülin direnci üzerindeki anti-inflamatuar etkisi. Farmasötik Araştırma Arşivleri . 2012; 35 (1):155–162. doi: 10.1007/s12272-012-0117-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    27. Endemann DH, Schiffrin EL Nitrik oksit, oksidatif fazlalık ve diyabetin vasküler komplikasyonları. Güncel Hipertansiyon Raporları . 2004; 6 (2):85–89. doi: 10.1007/s11906-004-0081-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    28. Lee WJ, In KL, Hyoun SK, ve diğerleri. a -lipoik asit, AMP ile aktifleştirilen protein kinazın aktivasyonu yoluyla obez sıçanlarda endotel disfonksiyonunu önler. Arterioskleroz, Tromboz ve Vasküler Biyoloji . 2005; 25 (12):2488–2494. doi: 10.1161/01.atv.0000190667.33224.4c. [ PubMed ] [ CrossRef ] [ Google Akademik ] eri
    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

    Yorum yap


    • #3
      Fosfoenolpiruvat karboksikinaz ve olgunlaşma sırasında yumuşak meyve etindeki organik asitlerin katabolizmasındaki potansiyel rolü

      Franco Famiani 1, Niccolò GM Kültürü , Alberto Battistelli , Valeria Casulli , Primo Proetti , Alvaro Standardi , Zhi-Hui Chen , Richard C. Leegood , Robert P Walker
      Bağlantılar yıkılmak Üyelik
      • 1Dipartimento di Scienze Agrarie e Ambientali, Università degli Studi di Perugia, Borgo XX Giugno 74, I-06121 Perugia, İtalya.
      Soyut


      Üzüm ve domates üzerinde yapılan önceki çalışmalar, olgunlaşmanın başlangıcında etlerinde fosfoenolpiruvat karboksikinaz (PEPCK) bolluğunun arttığını ve bunun sitrat ve/veya malat içeriğindeki bir azalmayla örtüştüğünü göstermiştir. Dolayısıyla PEPCK, bu meyvelerin olgunlaşması sırasında organik asit anyonlarının katabolizmasında işlev görebilir. Bu çalışmada, yaban mersini, ahududu, kırmızı kuş üzümü ve çileklerin etinde, gelişimlerinin farklı aşamalarında PEPCK bolluğu belirlendi. Ayrıca etteki sitrat, malat, çözünür şekerler, izositrat liyaz, NADP-malik enzimi, fosfoenolpiruvat karboksilaz ve piruvat, ortofosfat dikinaz miktarlarındaki değişiklikler de belirlendi. Malat veya sitratın disimilasyonunun olmadığı çilek etinde PEPCK tespit edilmedi. Diğer meyvelerin etindeki PEPCK bolluğu olgunlaşma sırasında üzüm ve domatestekine benzer bir miktara yükseldi. Yaban mersini ve kırmızı kuş üzümünün etinde PEPCK, malatın disimilasyonu olduğunda en fazla miktarda bulunuyordu. Ahududu etinde PEPCK, malat ve sitratın disimilasyonu olduğunda en fazla miktarda mevcuttu. Bu sonuçlar, olgunlaşma sırasında bu meyvelerin etindeki sitrat ve/veya malatın disimilasyonunda PEPCK'nin rol oynadığı ile tutarlıdır. Bununla birlikte PEPCK, malat veya sitratın disimilasyonu olmadığında yaban mersini, ahududu ve kırmızı kuş üzümünün etinde de mevcuttu ve bu, PEPCK'nin ek işlevlere sahip olabileceği olasılığını artırıyor. Yaban mersininin diseksiyonu, hem PEPCK hem de fosfoenolpiruvat karboksilazın aynı hücrelerde mevcut olduğuna dair kanıt sağladı.

      2018 ve 2019'da, ökaryotlarda NADP(H)'nin 2' fosfatının uzaklaştırılmasını katalize eden enzimlere ilişkin ilk iki rapor ortaya çıktı. İlk önce sitoplazmik protein MESH1 ( Q8N4P3 ), [15] , ardından mitokondriyal protein nokturnin [16] [17] rapor edildi. MESH1 ( 5VXA ) ve nokturninin ( 6NF0 ) yapıları ve NADPH bağlanmasının birbiriyle ilişkili olmadığı dikkate alınmalıdır.
      NADP+ ve NADPH'nin top ve çubuk modell

      Nikotinamid adenin dinükleotid fosfat


      Vikipedi, özgür ansiklopedi
      Nikotinamid adenin dinükleotid (NAD + /NADH) ile karıştırılmamalıdır .


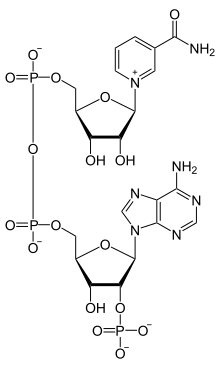
      Nikotinamid adenin dinükleotid fosfat , kısaltılmış NADP + veya daha eski gösterimle TPN (trifosfopiridin nükleotid), indirgeyici bir ajan olarak NADPH'yi gerektiren Calvin döngüsü ve lipid ve nükleik asit sentezleri gibi anabolik reaksiyonlarda kullanılan bir kofaktördür ('hidrojen') kaynak'). NADPH , oksitlenmiş form olan NADP + 'ın indirgenmiş formudur . NADP + her türlü hücresel yaşam tarafından kullanılır. [1]

      NADP +, adenin parçasını taşıyan riboz halkasının 2' pozisyonunda ilave bir fosfat grubunun varlığıyla NAD +' dan farklılık gösterir . Bu ekstra fosfat, NAD + kinaz tarafından eklenir ve NADP + fosfataz tarafından uzaklaştırılır. [2] Biyosentez [ kaynağı düzenle ]

      NADP + [ kaynağı düzenle ]


      Genel olarak NADP + , NADPH'den önce sentezlenir. Böyle bir reaksiyon genellikle yeni başlayan veya kurtarma yolundan gelen NAD + ile başlar ve NAD + kinazın ekstra fosfat grubunu eklemesiyle başlar. ADP-ribosil siklaz, kurtarma yolunda nikotinamidden senteze izin verir ve NADP + fosfataz, dengeyi korumak için NADPH'yi tekrar NADH'ye dönüştürebilir. [1] NAD + kinazın bazı formları, özellikle mitokondride bulunanlar, NADH'yi doğrudan NADPH'ye dönüştürmek için de kabul edebilir. [3] [4]Prokaryotik yol daha az anlaşılmıştır, ancak tüm benzer proteinlerde süreç benzer şekilde çalışmalıdır. [1] NADPH [ kaynağı düzenle ]


      NADPH, NADP +' dan üretilir . Hayvanlarda ve diğer fotosentetik olmayan organizmalarda NADPH'nin ana kaynağı , ilk adımda glikoz-6-fosfat dehidrojenaz (G6PDH) yoluyla pentoz fosfat yoludur . Pentoz fosfat yolu ayrıca glikozdan NAD(P)H'nin bir diğer önemli parçası olan pentozu da üretir. Bazı bakteriler de Entner-Doudoroff yolu için G6PDH kullanır ancak NADPH üretimi aynı kalır. [1]

      Yaşamın her alanında mevcut olan Ferredoksin-NADP + redüktaz , bitkiler ve siyanobakteriler dahil fotosentetik organizmalarda önemli bir NADPH kaynağıdır. Fotosentezin ışık reaksiyonlarının elektron zincirinin son basamağında ortaya çıkar . Calvin döngüsündeki karbondioksiti asimile etmek ve karbondioksitin glikoza dönüştürülmesine yardımcı olmak için biyosentetik reaksiyonlarda indirgeyici güç olarak kullanılır . Fotosentetik olmayan diğer yollarda da elektronların kabul edilmesinde işlevleri vardır: Nitrojen döngüsünde bitki asimilasyonu için nitratın amonyağa indirgenmesinde ve yağ üretiminde gereklidir . [1]

      NADPH'yi üretmenin daha az bilinen başka mekanizmaları da vardır ve bunların tümü ökaryotlarda mitokondrinin varlığına bağlıdır. Karbon metabolizması ile ilgili bu süreçlerdeki anahtar enzimler, malik enzimin NADP'ye bağlı izoformları , izositrat dehidrojenaz (IDH) ve glutamat dehidrojenazdır . Bu reaksiyonlarda NADP + , diğer enzimlerdeki oksitleyici ajan olarak NAD + gibi davranır . [5] İzositrat dehidrojenaz mekanizması, yağ ve muhtemelen karaciğer hücrelerindeki NADPH'nin ana kaynağı gibi görünmektedir. [6] Bu süreçler bakterilerde de bulunur. Bakteriler ayrıca NADP'ye bağımlı bir madde kullanabiliraynı amaç için gliseraldehit 3-fosfat dehidrojenaz . Pentoz fosfat yolu gibi, bu yollar da glikolizin bazı kısımlarıyla ilişkilidir . [1] NADPH'nin üretiminde yer alan karbon metabolizması ile ilgili bir başka yol, mitokondride nükleotid sentezini ve redoks homeostazisini sürdürmek için esas olarak tek karbonlu birimlerin kaynağı olarak serini kullanan mitokondriyal folat döngüsüdür. Mitokondriyal folat döngüsünün yakın zamanda kanser hücrelerinin mitokondrilerinde NADPH oluşumuna katkıda bulunan başlıca faktör olduğu öne sürülmüştür. [7]

      NADPH ayrıca karbon metabolizmasıyla ilgisi olmayan yollardan da üretilebilir. Ferredoksin redüktaz böyle bir örnektir. Nikotinamid nükleotid transhidrojenaz, hidrojeni NAD(P)H ile NAD(P) + arasında aktarır ve ökaryotik mitokondride ve birçok bakteride bulunur. Çalışmak için proton gradyanına bağlı olan ve olmayan versiyonlar var . Bazı anaerobik organizmalar , bir proton ve NADPH üretmek için hidrojen gazından bir hidrürü parçalayan NADP + bağlantılı hidrojenazı kullanır . [1]

      NADH gibi NADPH de floresandır . ~335 nm'lik (UV'ye yakın) nikotinamid absorbansında uyarılan sulu çözeltideki NADPH, 445-460 nm'de (mordan maviye) zirve yapan bir floresans emisyonuna sahiptir. NADP +' nın kayda değer bir floresansı yoktur. [8] İşlev [ kaynağı düzenle ]


      NADPH, biyosentetik reaksiyonlar ve reaktif oksijen türlerinin (ROS) toksisitesine karşı korumada yer alan oksidasyon-indirgeme için indirgeyici eşdeğerleri, genellikle hidrojen atomlarını sağlar ve glutatyonun (GSH) rejenerasyonuna izin verir . [9] NADPH aynı zamanda kolesterol sentezi , steroid sentezi, [10] askorbik asit sentezi, [10] ksilitol sentezi, [10] sitozolik yağ asidi sentezi [10] ve mikrozomal yağ asidi zinciri uzaması gibi anabolik yollarda da kullanılır .

      NADPH sistemi ayrıca NADPH oksidaz tarafından bağışıklık hücrelerinde serbest radikallerin üretilmesinden de sorumludur . Bu radikaller, solunum patlaması adı verilen bir süreçte patojenleri yok etmek için kullanılır . [11] Aromatik bileşiklerin , steroidlerin , alkollerin ve ilaçların sitokrom P450 hidroksilasyonu için indirgeyici eşdeğerlerin kaynağıdır . Kararlılık [ kaynağı düzenle ]


      NADH ve NADPH, bazik çözeltilerde çok kararlıdır, ancak NAD + ve NADP +, bazik çözeltilerde, nicelik belirleme için rahatlıkla kullanılabilecek bir floresan ürüne indirgenir. Bunun tersine, NADPH ve NADH asidik çözeltiler tarafından bozunurken, NAD + /NADP + aside karşı oldukça stabildir. [12] NADP(H)'yi koenzim olarak kullanan enzimler [ kaynağı değiştir ]
      • Adrenodoksin redüktaz : Bu enzim çoğu organizmada her yerde bulunur. [13] NADPH'den FAD'a iki elektron aktarır. Omurgalılarda steroid hormonlarını sentezleyen mitokondriyal P450 sistemleri zincirindeki ilk enzim olarak görev yapar. [14]
      Substrat olarak NADP(H) kullanan enzimler [ kaynağı düzenle ]


      Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
      Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

      Yorum yap


      • #4
        Kuru Göz Olmayan Video Terminali Operatörlerinde Astenopi Üzerine Pilot, Aşama II, Gözlemsel, Vaka Kontrollü, 1 Aylık Çalışma: Çinko, L-Karnitin, Ekstraktın Sabit Bir Kombinasyonunun Oral Tüketimi Öncesi ve Sonrası Kontrast Hassasiyeti ve Yaşam Kalitesi Mürver, Frenk Üzümü ve Eleutherococcus Özü.

        Gemma Caterina Maria Rossi , 1, * Luigia Scudeller , 2 Federica Bettio , 1 ve Giovanni Milano 1
        Luca Agnifili, Akademik Editör
        Yazar bilgileri Makale notları Telif Hakkı ve Lisans bilgileri PMC Yasal Uyarı
        1 Cerrahi Bilimler Bölümü, Üniversite Göz Kliniği, Fondazione IRCCS Policlinico San Matteo, P.le Golgi 19, 27100 Pavia, İtalya; moc.liamg@aciredefoitteb.f (FB); ti.vpinu@onalimg (GM)
        2 Klinik Epidemiyoloji ve Biyometrik Birim, Bilimsel Yön, Fondazione IRCCS Policlinico San Matteo, P. le Golgi 19, 27100 Pavia, İtalya; ti.vp.oettams@relleducs.l
        * Yazışma: moc.liamg@dm.issor.ammeg ; Tel.: +39-0382-526213; Faks: +39-0382-527006 İlişkili Veriler

        Veri Kullanılabilirliği Beyanı
        Şuraya git: Soyut


        Çalışmanın amaçları, videoterminal (VDT) kullanıcılarında göz yorgunluğu semptomlarını kontrol etmede çinko, L-karnitin, mürver özü, siyah frenk üzümü ve Eleutherococcus özütünün sabit bir kombinasyonunun oral alımının yeteneğini ve etkinliğini araştırmak ve kayıt altına almaktı. kontrast duyarlılığı üzerindeki etkileri. Kuru göz hastalığı olmayan VDT ​​çalışanlarında tek merkezli, faz II, gözlemsel, vaka kontrollü, 1 aylık bir çalışma gerçekleştirildi. Demografik özellikler ve VDT/gündeki fiili saat sayısı dikkate alınmıştır. Tüm deneklere kontrast duyarlılığının değerlendirilmesi de dahil olmak üzere tam bir oftalmik muayene yapıldı ve başlangıçta ve bir ay sonra bilgisayarlı görme semptom ölçeği anketini doldurdu. Toplam 30 Kafkasyalı denek gerekli dahil etme kriterlerine uydu ve çalışmayı tamamladı; 15 denek tedavi edildi (T) ve 15 kişi kontroldü (C). Başlangıçtaki tüm klinik veriler her iki grupta da benzerdi (p > 0,05): bir ay sonra tüm deneklerin görme keskinliği, kırma kusuru ve göz içi basıncı (GİB) stabildi; ekrana maruz kalma süresi değişmedi. Semptomlarla ilgili olarak, randomizasyon sırasında gruplar benzer bir puana sahipti: T'de 33,1 ± 3,3 ve C'de 32,8 ± 5,6. Bir ay sonra, bilgisayarlı görme semptom ölçeği (CVSS) anket puanı -14,1 ± 3, 1 azaldı ( p = 0,000) ve −2,3 ± 1,8 ( p =0,568), sırasıyla. Kontrast duyarlılığı ile ilgili olarak, grup C'de uzaysal frekansların değerleri değişmeden kalırken, tedavi edilen grupta derece başına uyarı başına hemen hemen tüm döngülerde iyileşme görüldü. Çinko, L-karnitin, mürver özü, siyah frenk üzümü ve eleutherococcus özütünün sabit bir kombinasyonunun ağız yoluyla alınması, kuru göz hastalığı belirtisi olmayan VDT ​​çalışanlarında kontrast duyarlılığını ve semptomlarını önemli ölçüde iyileştirebilir.

        Anahtar Kelimeler: diyet, yaşam tarzı, nutrasötikler, göz, VDT, video görüntüleme terminali, kuru göz, kontrast duyarlılığı, yaşam kalitesi, oküler yüzey, COVID-19
        Şuraya git: 1. Giriş


        Asıl işi olarak haftada en az 20 saati video görüntüleme terminalinde (VDT) geçiren çalışanlara “video terminali çalışanları” adı verilmektedir. Video terminallerinin uzun süreli kullanımı yalnızca kas-iskelet sistemi bozukluklarına yol açmakla kalmaz, aynı zamanda oküler komplikasyonlara da neden olur.

        Mevcut COVID-19 koronavirüs salgını sırasında nüfusun büyük bir kısmı evde çok daha fazla zaman harcadı ve birden fazla cihazda dijital etkinliklere katıldı.

        Bilgisayarların, PDA'ların ve cep telefonlarının ekranı önünde geçirilen süre olarak tanımlanabilecek "ekran süresi", karantina döneminde dramatik bir şekilde arttı, öyle ki çoğu insan en az bir cihaz kullanmış ve halen de kullanıyor. günde 6 saatten fazla [ 1 ].

        Sonuç olarak, son iki yılda, her yaştan birçok insanda, uzun süreli göz yorgunluğu nedeniyle VDT kullanımından kaynaklanan göz bozukluklarını tanımlamak için 2002 yılında tanıtılan bir durum olan "bilgisayar görme sendromu" (CVS) semptom ve bulguları gelişti. ve bir monitöre sürekli görsel dikkat ve azaltılmış göz kırpma hızı [ 2] Bilgisayarla çalışmak göz kaslarını zorluyor: Ekrandaki, belgedeki metin ile klavyedeki semboller arasındaki parlak kontrast aşırı, ışığa uyum sağlamak için günde 25.000'e kadar hareket yapılıyor. Nesneler > 6 m mesafeden gözlemleniyorsa göz kasları dinlenme pozisyonundadır; PC ekranını kullanarak gözler çok yakın nesnelere uzun süre bakar. Okunacak monitörler ve belgeler yaklaşık olarak aynı mesafeye yerleştirilmezse, göz kasları sürekli olarak odağı değiştirmeye zorlanır [ 2 ].

        Sonuçlar, bağlılık ve uzun süreli statik pozisyonla bağlantılı aşırı konaklama ve yakınsama ve iş istasyonunun aydınlatma koşullarına bağlı olarak gözbebeği hareketliliği ve retinal adaptasyonun aşırı yüklenmesidir.

        İklimlendirme ve düşük nem gibi çevresel koşullar, "bilgisayar görme sendromu" patogenezinde kofaktör görevi görür ve etkilerini yukarıda sıralanan fizyolojik etkilere ekler [ 2 , 3 ].

        Sorun aynı zamanda şudur: Görsel yorgunluk, göz problemlerine neden olur ve bu nedenle kişide rahatsızlık yaratır, ancak aynı zamanda yüksek düzeyde yorgunluğun, işteki hataların ve kayıp iş günlerinin de ana nedenidir.

        2005 yılında yapılan bir incelemede "astenopi, parlama ve akomodatif zorluğun CVS'nin tüm yönleri olduğu" ve sıklıkla azalan göz kırpma ve kuru göz ile ilişkili olduğu bulunmuştur [ 2 , 4 ]. VDT kullanıcılarında gözlenen kuru göz esasen artan gözyaşı buharlaşmasından [ 5 ] ve meibomian bezlerinin arızasından kaynaklanmaktadır [ 6 ], bu da kuru gözün şiddetini artırabilen içsel ve dışsal koşullar arasında kısır bir etkileşim döngüsüne neden olur [ 7 ] ve görüş kalitesi üzerinde olumsuz etkisi olabilir. Görme kalitesi, kontrast duyarlılığını etkileyen “oküler yüzey” sisteminin sağlığından etkilenir.

        Uluslararası çalışmalar, VDT çalışanları arasında %4 ila %6 (doğrulanmış kuru göz) ile %40-55 (şüpheli kuru göz) arasında değişen yüksek bir kuru göz prevalansı bulmuştur [8, 9, 10 , 11 ] , bazı VDT çalışanları ise Bilgisayar kullanımına bağlı göz problemleri olsa bile göz kuruluğu yaşamazlar.

        Bu çalışmanın temel amacı, çinko, L-karnitin, mürver ekstraktı, frenk üzümü ve Eleutherococcus ekstraktından oluşan sabit bir kombinasyonun oral alımının göz yorgunluğu semptomlarını kontrol etme (belirli bir anket aracılığıyla) yeteneğini ve etkinliğini araştırmaktı. Kuru göz tanısı olmayan ancak oküler rahatsızlık semptomları olan VDT ​​kullanıcılarında görme kalitesini (kontrast duyarlılık testi aracılığıyla) iyileştirin.

        Şuraya git: 2. Malzemeler ve Yöntemler


        Yerel Etik Komite onayı alındıktan sonra Helsinki Bildirgesi'ne göre Pavia Üniversitesi Oftalmoloji Kliniğinde tek merkezli, faz II, gözlemsel, vaka kontrollü, 1 aylık, kar amacı gütmeyen bir çalışma gerçekleştirildi (prot. 2015000565) ). Tüm denekler kayıttan önce yazılı ve bilgilendirilmiş onam sağladı.

        Malzemeler ve yöntemler , mevcut çalışmanın bir alt çalışması olduğu, VDT çalışanlarında kuru göz prevalansını değerlendiren önceki bir makalede anlatılmıştır [ 11 ].

        Bu çalışmaya dahil edilme kriterleri şunlardı: Vakıfta VDT çalışanı olarak çalışan ardışık denekler, D.LGS 81/08'e (yani İtalya'da işçilerin zorunlu sağlık değerlendirmesi) göre oküler durum değerlendirmesini tamamlamak için göz kliniğine başvurdu. ; (rastgele veya diğer) seçim olmadan; kuru göz yokluğu; çalışmaya katılma isteği; herhangi bir cinsiyet ve herhangi bir yaş; kırılma düzeltmesi <± 1 D ile görme keskinliği 0,9 ondalık sayıdan daha iyi; ve şeffaf diyoptrik araçlar.

        Kuru göz tanısı, aşağıdaki oftalmik muayeneye dayanıyordu: gözyaşı filmi kırılma süresinin (T-BUT) < 10 s ve herhangi bir dereceden (örn. > derece) kornea boyanmasının eş zamanlı varlığı olarak kuru göz hastalığının (DED) varlığı 0); T-BUT < 10 s varlığına veya herhangi bir derecede kornea lekelenmesine bağlı olarak DED şüphesi; DED'nin yokluğu ise T-BUT > 10 saniyenin eşlik eden varlığı ve kornea boyanmasının olmamasıydı (yani derece 0) [ 11 , 12 ].

        Hariç tutma kriterleri: son 6 ay içinde göz ameliyatı geçirmiş veya sistemik veya oküler hastalıkları (örneğin romatoid artrit, Sjogren sendromu, rosacea, bulaşıcı hastalıklar, önceden glokom tanısı, diyabetik retinopati, optik nörit, multipl skleroz, oküler yüzeyin durumunu veya kontrast duyarlılığının sonuçlarını etkileyebilecek hipofiz adenomu).

        Kuru göz hastalığı olmayan ardışık VDT çalışanlarından oluşan bu numuneden , sabahları 250 mL'lik bir kapta çinko, L-karnitin, mürver özü, frenk üzümü ve Eleutherococcus özü (Meramirt CM®) içeren sabit bir kombinasyondan günde bir tablet almaları istendi. bir ay boyunca bir bardak su (tedavi edilen grup). Benzer bir örnek, yani göz kuruması olmayan ancak tablet almayan ardışık VDT çalışanları "kontrol grubu" olarak değerlendirildi.

        Çalışmaya katılan tüm deneklere kontrast duyarlılığı değerlendirmesi yapıldı ve hem kayıt sırasında hem de bir aylık takip sonrasında VDT çalışanlarında kuru göz semptomları hakkında bir anket dolduruldu.

        Tüm deneklere, her iki ziyarette de yakın ve uzak en iyi düzeltilmiş görme keskinliği (VA), T-BUT ve kornea boyamasını içeren tam bir oftalmik muayene yapıldı.

        Her denek için aşağıdaki değişkenler toplandı: doğum tarihi ve cinsiyet, eğitim düzeyi, sosyo-mesleki kategori, sistemik hastalıklar ve tedaviler, göz hastalıkları ve tedavileri, kontakt lens kullanımı, VDT'de çalışma yılı, okulda geçirilen gerçek saat sayısı Günlük VDT, günlük molaların sayısı ve saatleri.

        CVSS17, farklı derecelendirme ölçeklerine sahip 17 madde içeren bir ankettir. Anketin 17 maddesi, semptomların şiddeti, sıklığı ve deneklerin görüşleri ile ilgili olarak 15 farklı semptom hakkında bilgi elde etmek için tasarlanmıştır [ 13 ]. Her iki cinsiyet için ve hem presbiyop hem de presbiyop olmayan kişiler için geçerlidir.

        Ziyaretin sonuçlarına (kötü/iyi haberlerin iletilmesi) müdahaleyi önlemek için, tüm deneklerden oftalmolog ziyaretinden önce anketi kendilerinin doldurması istendi.

        Aynı gözlemci (GCMR), bu değerlendirmelerin değişkenliğini en aza indirmek için floresan boyama ve parçalanma süresini gerçekleştirdi.

        Kontrast duyarlılığı testi, aydınlık ve karanlık (kontrast) arasındaki daha ince artışları ayırt etme yeteneğini ölçer. Kontrast duyarlılığı, düşük ışık, sis veya parlama durumlarında veya nesneler ile arka plan arasındaki kontrastın düşük olduğu durumlarda önemli bir rol oynar.

        Deneklerin optik düzeltme kullanması durumunda test gözlük veya kontakt lenslerle yapılır. Bu çalışmada Vistech kontrast duyarlılık testi kullanıldı. Bu grafikler sinüs dalgası ızgaralarından oluşur. Her grafik, gri bir arka plan üzerinde beş satır ve dokuz sütunlu dairesel fotoğraf plakaları (disk) içerir. Her satırın farklı uzamsal frekansı vardır (üç metrede 1,5 ila 18 cpd) ve sıra içindeki kontrast soldan sağa doğru azalır. Izgaralar üç yönde sunulur: dikey 90 derece, 15 derece saat yönünde veya saat yönünün tersine. Kontrast duyarlılığı değerlendirmesini yalnızca bir operatör (FB) gerçekleştirdi; incelenen deneklerin kontrol grubunun mu yoksa tedavi edilen grubun parçası mı olduğunu bilmeden testi yalnızca gerçekleştirdi.

        Meramirt CM ® çinko (10 mg), L-karnitin (50 mg), mürver meyve özü (300 mg), frenk üzümü (100 mg) ve Eleutherococcus kökü özü (50 mg) bazlıdır. Bu bileşenler, serbest radikallerin oksitleyici etkisine karşı koymada yararlı olabilir ve görsel döngüde yararlı bir rol oynayabilir. Ayrıntılı olarak Eleutherococcus, vücudun iç ve dış etkenlerin neden olduğu aşırı çalışmadan kaynaklanan metabolik strese karşı direncini artıran bir “adaptojen” olarak tanımlanır [ 14 , 15 ]. Çinko, tüm retina nöron türlerinde ve ayrıca pigment epitel hücrelerinde bulunur ve retinanın, özellikle de retina pigment epitelinin çok sayıda enzimatik aktivitesine katılır ve oküler dejeneratif süreçlerin önlenmesinde önemlidir. Dokular [16 ]

        Karnitin, hücre için enerji üretimine yardımcı olur, yağ asitlerinin metabolik kullanımları için iletilmesini sağlar ve oküler kas dokusunun metabolizması için faydalıdır. Ayrıca hayvan modellerinde antioksidan özellikler göstermiştir [ 17 ]. Mürver, antosiyaninler ve kateşinler açısından zengindir ve görsel pigmenti uyarır, böylece özellikle düşük ışık koşullarında görme kalitesini artırır [ 18 ]. Frenk üzümü meyvesinin özü polifenoller açısından zengindir; kılcal damar duvarının işlevselliğinin normal seviyelerde korunmasına veya onarılmasına yardımcı olur, böylece küçük retina damarlarının bütünlüğünü ve retina dokusunun trofizmini destekler [ 19 ]. İstatistiksel analiz


        Çalışma, dahil edilme kriterlerinin tamamını karşılayan ve hariç tutma kriterlerinin hiçbirini karşılamayan tüm deneklere önerildi. Olguların demografik, klinik ve laboratuvar özelliklerine yönelik tanımlayıcı istatistikler üretildi. Normal dağılan değişkenler için ortalama ve standart sapma (SD), normal dağılmayan değişkenler için ortanca ve çeyrekler arası aralık (IQR), kategorik değişkenler için sayı ve yüzdeler sunulmuştur. Gruplar, sürekli değişkenler için veri dağılımına göre parametrik veya parametrik olmayan testlerle ve kategorik değişkenler için Pearson's Chi2 testiyle (uygun olduğu yerde Fisher'in kesin testi) karşılaştırıldı.

        Her durumda iki kuyruklu testler kullanıldı. P değeri için anlamlılık sınırı 0,05 idi.

        Şuraya git: 3. Sonuçlar


        Tüm dahil edilme kriterlerini karşılayan ve hariç tutma kriterlerinin hiçbirini karşılayan toplam 30 Beyaz denek, çalışmaya katılmayı kabul etti ve bilgilendirilmiş onam imzaladı. Onbeş grup T = tedavi (sabit nutrasötik kombinasyonunun bir tabletinin günlük alımı) ve 15 grup C = kontrol grubuna randomize edildi.

        Demografi şu şekilde özetlenmiştir: tablo 1. tablo 1


        Başlangıçtaki demografi.
        Yaş (yıl, ortalama ± SD) 44,3 ± 9,5 45,6 ± 8,7
        Cinsiyet (kadın, n , %) 11 (77,3) 12 (80)
        Okullaşma düzeyi ( n , %)
        - ortaokul 4 (26,7) 6 (40)
        - lise 8 (53,3) 6 (40)
        - üniversite mezunu 3 (20) 3 (20)
        VDT'de geçirilen günlük süre (saat.dakika) 7,30 ± 15 7,15 ± 30
        Sistemik hastalıklar
        - sistemik hipertansiyon 3 (20) 2 (13,3)
        - tiroid bozuklukları 1 (6,6) 1 (6,6)
        - venöz bozukluk - 1 (6,6)
        - endişe 1 (6,6) -
        Ayrı bir pencerede aç
        SD: Standart sapma.

        Kısaca deneklerin çoğu (%23,77) kadındı; tüm denekler IRCCS Policlinico San Matteo Vakfı'nda çalışıyordu; ve okullaşma düzeyi iyi olup, 14 kişi (%47) lise mezuniyeti ve 6 kişi (%20) lisans diplomasına sahiptir.

        Deneklerin yaklaşık yarısı presbiyop (%16,53) iken yaklaşık dörtte biri mesafe düzeltmesi için gözlük kullanıyordu (%8,26). Görme keskinliği yüksekti (0,97 ± 1,1 ondalık sayı). Ortalama GİB 14,5 ± 1,3 mmHg idi. Başlangıçtaki muayenede tüm klinik veriler her iki grupta da benzerdi ( p > 0.05).

        1 aylık çalışma sırasında tüm katılımcılarda görme keskinliği, kırılma kusuru, GİB ve ekrana maruz kalma süresi açısından stabilite vardı.

        Şekil 1CVSS anketi ile incelenen semptomlarda zaman içinde meydana gelen değişikliklere ilişkin verileri rapor eder. Kayıt sırasında her iki grup da benzer bir puana sahipti: tedavi edilenlerde 33,1 ± 3,3 ve kontrolde 32,8 ± 5,6. Bir ay sonra, bilgisayarlı görme semptom skoru sırasıyla -14,1 ± 3, 1 ( p = 0,000) ve -2,3 ± 1,8 ( p = 0,568) azaldı .
        Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı besinler-13-04449-g001.jpg
        Şekil 1
        Tedavi edilen grupta ve kayıt sırasında ve 1 ay sonra kontrolde olan CVSS17 anket puanı. Tedavi edilen hastalarda skor t0'dan t1'e önemli ölçüde iyileşti.

        Kontrast hassasiyeti ile ilgili olarak, kontrol grubunda uzaysal frekansların değerleri önemli ölçüde değişmeden kalırken, tabletle tedavi edilen grupta derece başına uyarı başına hemen hemen tüm döngülerde iyileşme görüldü (Tablo 2). Tablo 2


        Günde bir tablet Meramirt CM alan deneklerde (tedavi edilen, T) ve kontrol grubunda (kontrol, C) kontrast duyarlılığı bir aylık süre içinde değişir. (+ = muayenede iyileşme; − = muayenede kötüleşme).
        İşlenmiş (T)
        1.5 30–120 52,3 ± 16,6 +37,7 ± 15,1 0,012
        3 40–170 78,3 ± 25,2 +27,7 ± 15,1 0,052
        6 50–180 46,5 ± 9,9 +6 ± 8,5 ns
        12 20–130 18,7 ± 2,6 +16,5 ± 2,5 0,010
        18 5-70 12,2 ± 1,8 +15 ± 1,7 0,000
        Kontrol (C)
        1.5 30–120 65,4 ± 17,6 −2,37 ± 16,5 ns
        3 40–170 101,2 ± 36,6 +8,1 ± 9,2 ns
        6 50–180 69,8 ± 9,5 −4,7 ± 4,5 ns
        12 20–130 29,5 ± 6,5 −1,5 ± 7,2 ns
        18 5-70 12,5 ± 2,3 +4,1 ± 2,8 ns
        Ayrı bir pencerede aç
        Şuraya git: 4. Tartışma


        Bu çalışma, görme üzerinde spesifik etkileri olan sabit bir nutrasötik kombinasyonunun (çinko (10 mg), L-karnitin (50 mg), mürver özü (300 mg), siyah frenk üzümü (100 mg) ve Eleutherococcus kökü) oral alımının olduğunu göstermiştir. ekstraktı (50 mg)) kontrast duyarlılığı ile incelenen görme kalitesini artırabilir ve ayrıca bilgisayarlı görme sendromunun semptomları üzerinde olumlu bir etkiye sahiptir.

        Bilgisayar görme sendromuyla ilgili semptomları araştırmak ve bunların yaşam kalitesi üzerindeki etkilerini ölçmek için doğrulanmış ve güvenilir bir anket olan CVSS'yi kullanmaya karar verdik. Önceki literatür bu anketi kullanmış ve saatlerce VDT kullanımının görmeyle ilişkili yaşam kalitesini olumsuz etkilediğini kaydetmiştir; özellikle dijital ekran kullanımı arttıkça ve kuru gözün başlamasıyla birlikte rahatsızlık düzeyinin de arttığı görülmektedir [ 11 ].

        Bu çalışmada iki ana nedenden ötürü, yalnızca oküler yüzey değişikliği olmayan, yani kuru göz hastalığı olmayan ancak iş için VDT ​​kullanımına bağlı görsel rahatsızlık semptomları bildiren deneklerin incelenmesine karar verildi: (1) belirtilerin kendisi yorgunluk ve işteki hataları etkiler, işin kalitesini etkiler ve hatta iş günü kaybına yol açabilir; (2) gözyaşı filmi kalıntıları, konjonktival boyama, kornea boyaması ve Schirmer test skoru kontrast duyarlılığı ile anlamlı düzeyde ilişkili değildir [ 20 ].

        Görme keskinliği genellikle rutin göz muayenesi sırasında değerlendirilir, ancak kontrast duyarlılığı görme kalitesinde çok önemli bir rol oynar. VDT'nin uzun süreli kullanımı gibi oküler yüzey bozuklukları ve kuru göze yol açan durumlar, hem görme keskinliğini (epitelyal keratit veya kuru göze bağlı oküler inflamasyon) hem de görüş kalitesini (oküler yüzeyin dengesizliği) değiştirerek görme fonksiyonunu etkileyebilir. . Güncel bir makale [ 20 ], şiddetli meibomian bezi tıkanıklığının, daha kötü ortalama log kontrast duyarlılığı ile önemli ölçüde ilişkili olduğunu ve meibomius bezi sekresyonlarındaki anormallik derecesinin, daha kötü ortalama log kontrast duyarlılığı ile önemli ölçüde ilişkili olduğunu, daha uzun gözyaşı filmi parçalanma süresinin ise daha uzun olduğu bulunmuştur. daha iyi ortalama log kontrast duyarlılığı ile önemli ölçüde ilişkilidir.

        Kontrast duyarlılığı, görünür ve görünmez arasındaki eşiği tanımlayan iyi tanımlanmış sınırlara sahip olmayan hedefler üzerindeki aydınlatmadaki küçük değişiklikleri gözün tespit etme yeteneğidir [21 ] ; dolayısıyla görme kalitesini yansıtır ve görme keskinliği kadar önemli bir ölçüyü temsil eder.

        Bir ay boyunca çinko, L-karnitin, mürver özü, siyah frenk üzümü ve Eleutherococcus özütünün sabit bir kombinasyonunun alınması, daha yüksek uzaysal frekanslarda kontrast duyarlılığını artırdı. Yaşın kontrast duyarlılığını etkilediği, muhtemelen mercek küresel sapmasındaki değişikliklerden dolayı orta ve yüksek uzaysal frekanslarda doğrusal bir düşüşe neden olduğu bilinmektedir, ancak düşük uzaysal frekanslara yönelik duyarlılık yaştan bağımsızdır [22 ] .

        Kırma kusurları düzeltilmediğinde kontrast duyarlılığı da değişir: hafif kırma kusurları için öncelikle daha küçük ızgara boyutlarına veya daha yüksek uzaysal frekanslara bir azalma olur; orta ve şiddetli kırılma kusurları için kontrast duyarlılığı ortada ve daha sonra daha büyük ızgara boyutlarında (orta ila düşük uzaysal frekanslar) azalır.

        Örneklemimiz görme keskinliği çok iyi ve kırma kusuru düşük (uygunluk kriterlerine göre +/− 1D'den fazla olmayan) kişilerden oluşuyordu ve hiçbir kişi kontakt lens kullanmıyordu; bu nedenle deneklerimizde daha yüksek uzaysal frekanslarda kontrast duyarlılığında gözlemlenen iyileşme, kırılma hatalarının düzeltilmesinden bağımsızdı ve nutrasötiklerin alımıyla açıklanabilirdi. Bu besinlerin alımının incelenen numunenin kırılma durumunu iyileştirdiği görülmektedir.

        Şu anda, antosiyaninlerin ve flavonoidlerin hem kan-sulu bariyeri hem de kan-retina bariyerini geçtikten sonra oküler dokularda geniş çapta dağıldığı in vivo ve in vitro çalışmalardan iyi bilinmektedir [ 23 , 24 ]. Bu kanıt, verilerimizi, bu besinlerin antioksidan etkilerinin olumlu bir etkisi olarak açıklayabilir, bu da retina kılcal damarlarında kan dolaşımının iyileşmesine ve artmasına ve görmeyi iyileştiren retina pigmentlerinin üretimine yol açar.

        Bizim gözlemlerimiz Nakaishi'nin çalışmasıyla da uyumlu; İnsanların siyah frenk üzümü alımını inceleyen çift kör, plasebo kontrollü çapraz bir çalışmada yazarlar, günlük antosiyanin alımının sağlıklı deneklerde karanlığa adaptasyonu, astenopi semptomlarını, göz yorgunluğunu ve VDT çalışmasının neden olduğu geçici kırılma değişikliklerini iyileştirdiğini bulmuşlardır [ 25 ] . Tüm bu sonuçlar, bazı spesifik besinlerin alımı yoluyla VDT'nin iş kaynaklı astenopiyi önleme olasılığını ortaya koymaktadır.

        Çalışmamızda incelenen moleküllerin yararlı antioksidan, antiinflamatuar, nöroprotektif, immünomodülatör ve adaptojenik etkisi retina, vitreus ve oküler yüzey üzerinde gösterilmiştir [26 ] . Önceki çalışmalar [ 27 , 28 , 29 ] diyet değişikliklerinin ve diyet takviyelerinin oküler yüzey koşullarını önlemek ve/veya tedavi etmek için kullanılabileceğini göstermiştir. Hem gıda alımından hem de nutrasötiklerden gelen mikro besinler, çeşitli metabolik yollar yoluyla oküler yüzey bileşenlerinin morfolojisini ve fonksiyonunu etkileyebilir, bu da görme kalitesinin ve ayrıca yaşam kalitesinin artmasına neden olabilir.

        Öte yandan besin takviyesine yönelik tüm bu çalışmaların temel sınırlaması, alımdan önce ve sonra plazma düzeyi dozajının bulunmamasıdır. Veriler yalnızca temel diyet ve diyet uygulamalarından (vejetaryen, vegan vb.) değil, aynı zamanda nutrasötik alım süresinin uzunluğundan da etkilenebilir [ 29 ].

        CVSS ile incelenen yaşam kalitesine ilişkin olarak: Meramirt CM ®'nin 1 aylık oral alımından sonra skorda önemli ölçüde iyileşme görüldü ve bununla birlikte deneklerin görsel rahatsızlıkları da arttı; Yaşam kalitesi ile ekranın kullanım miktarı arasında bir ilişki olduğu gösterilmiştir [ 11 ]. İncelenen maddelerin oral alımı, muhtemelen bizim tarafımızdan incelenen ürünün adaptojenleri ve uyarıcıları olarak kabul edilen bileşenlerinin yaygın olarak kabul edilen etkilerinden dolayı, örneğimizdeki yaşam kalitesi algısını iyileştirebildi ve normalleştirdi. metabolizma.

        Verilerimiz ümit vericidir ancak iki ana sınırlaması vardır: kısa takip süresi ve küçük örneklem büyüklüğü.

        Bu ön verileri doğrulamak ve ekran başında uzun saatler harcayan hastalarda nutrasötiklerin maliyet etkinliğini değerlendirmek için daha fazla gözlem yapılması gerekmektedir; VDT kullanıcılarının yaşadığı görsel semptomların çoğunun yalnızca geçici olduğu ve genellikle bilgisayarı kestikten sonra azaldığı akılda tutulmalıdır. çalışmak veya dijital cihazlar kullanmak.

        Görmede azalma olduğunu bildiren VDT ​​çalışanlarını muayene ederken ilk yapılması gereken, sorunun nedenini belirlemektir. Çünkü fiziksel bir sorunun (kuru göz varlığı, blefarit, hatalı kırma kusuru varlığı gibi) düzeltilmesi gerekir. ortadan kaldırılması daha zor hale gelebilecek semptomlar.

        Ayrıca, bilgisayarlı görme sendromuyla ilişkili tüm görsel problemler, ekrandaki aydınlatma ve parlamayı kontrol ederek, ekranı izlemek için doğru çalışma mesafeleri ve duruş oluşturarak ve oküler ve görsel bozuklukları önlemek için küçük görme problemlerinin bile uygun şekilde düzeltilmesini sağlayarak araştırılmalı ve azaltılmalıdır. duruş sorunları.

        Tüm bu önlemlere rağmen göz yorgunluğu ve sonuçları mevcut olduğunda, bu çalışma bazı nutrasötiklerin uzun süreli VDT kullanımına bağlı semptomları ve buna bağlı görme kalitesini iyileştirebileceğini göstermiştir. Bu gözlemler, VDT çalışanı olmayan ancak COVID-19 salgını nedeniyle VDT'ye çok fazla zaman harcamak zorunda kalan ve bilgisayar görme sendromu semptomları ve belirtileri geliştiren birçok kişide ortaya çıkan bozukluklara genelleştirilebilir.

        Bu nutrasötiklerin alımı, görme kalitesinin iyileştirilmesi ve VDT kullanımıyla ilişkili semptomların azaltılması, bunları alanların konsantrasyonu ve iş verimliliği üzerinde dolaylı avantajlar sağlayabilir.

        Şuraya git: 5. Sonuçlar


        Bazı nutrasötiklerin alımı, CVSS anketinde de ortaya çıktığı gibi, bilgisayar ekranının önünde saatlerce vakit geçiren kişilerde kontrast duyarlılığını iyileştirebilir, rahatsızlık semptomlarını azaltabilir ve yaşam kalitesi algısını olumlu yönde etkileyebilir.

        Hem görme kalitesinin hem de bilgisayarlı görme sendromu semptomlarının iyileşmesi, potansiyel olarak daha iyi iş performansına yol açabilecek ve bilgisayarda çalışmayla ilgili rahatsızlıklarda ve göz bozuklukları nedeniyle kaybedilen iş günlerinde azalmaya yol açabilecek iki faktördür.

        Şuraya git: Yazar Katkıları


        Kavramsallaştırma, GCMR; metodoloji, GCMR ve LS; biçimsel analiz, LS; soruşturma, GCMR ve FB; veri iyileştirme, GCMR; yazma—orijinal taslak hazırlama, GCMR; yazma – inceleme ve düzenleme, GCMR, LS ve GM Tüm yazarlar yazının yayınlanmış versiyonunu okudu ve kabul etti.

        Şuraya git: Finansman


        Bu araştırma hiçbir dış finansman almamıştır.

        Şuraya git: Kurumsal İnceleme Kurulu Beyanı


        Çalışma Helsinki Deklarasyonu kurallarına uygun olarak gerçekleştirildi ve Fondazione IRCCS Policlinico San Matteo Yerel Etik Komitesi (protokol kodu 2015000565) tarafından onaylandı.

        Şuraya git: Bilgilendirilmiş Onam Beyanı


        Çalışmaya katılan tüm deneklerden bilgilendirilmiş onam alındı.

        Şuraya git: Veri Kullanılabilirliği Beyanı


        Bildirilen sonuçları destekleyen veriler, çalışma sırasında oluşturulan bir veri setinde bulunabilir.

        Şuraya git: Çıkar çatışmaları


        Yazarlar çıkar çatışması olmadığını beyan etmektedir. Fon sağlayıcıların çalışmanın tasarımında hiçbir rolü yoktu; verilerin toplanmasında, analiz edilmesinde veya yorumlanmasında; Makalenin yazılmasında veya sonuçların yayınlanması kararında.

        Şuraya git: Dipnotlar


        Yayıncının Notu: MDPI, yayınlanan haritalarda ve kurumsal bağlantılarda yer alan yetki iddiaları konusunda tarafsız kalır.


        Şuraya git: Referanslar

        1. Usgaonkar U., Shet Parkar SR, Shetty A. COVID-19 salgınının karantina döneminde dijital cihaz kullanımının gözler üzerindeki etkisi. Hint J. Oftalmol. 2021; 69 :1901–1906. doi: 10.4103/ijo.IJO_3500_20. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Sheedy J. Adında ne var: “Bilgisayar görme sendromu”? Optometri. 2002; 73 :399–402. [ PubMed ] [ Google Akademik ]
        3. Ranasinghe P., Wathurapatha WS, Perera YS, Lamabadusuriya DA, Kulatunga S., Jayawardana N., Katulanda P. Gelişmekte olan bir ülkede bilgisayar ofisi çalışanları arasında bilgisayar görme sendromu: Yaygınlık ve risk faktörlerinin değerlendirilmesi. BMC Res. Notlar. 2016; 9 :150. doi: 10.1186/s13104-016-1962-1. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Blehm C., Vishnu S., Khattak A., Mitra S., Yee RW Bilgisayarlı Görme Sendromu: Bir İnceleme. Hayatta kalma. Oftalmol. 2005; 50 :253–262. doi: 10.1016/j.survophthal.2005.02.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        5. Tsubota K., Nakamori K. Kuru gözler ve video görüntüleme terminalleri. N. İngilizce J. Med. 1993; 328 :584. doi: 10.1056/NEJM199302253280817. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        6. Wu H., Wang Y., Dong N., Yang F., Lin Z., Shang X., Li C. Meibomiam bezi disfonksiyonu, görsel ekran terminali çalışanlarında kuru göz koşullarının ciddiyetini belirler. PLoS BİR. 2014; 9 :e105575. [ PMC ücretsiz makalesi ] [ PubMed ] [ Google Akademik ]
        7. Uluslararası Kuru Göz Çalıştayı (DEWS) Raporu Kuru göz hastalığının tanımı ve sınıflandırılması. Ocul. Sörf. 2007; 5 :75–89. doi: 10.1016/S1542-0124(12)70081-2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        8. Courtin R., Pereira B., Naughton G., Chamoux A., Chiambaretta F., Lanhers C., Dutheil F. Görsel görüntüleme terminali çalışanlarında kuru göz hastalığının yaygınlığı: Sistematik bir inceleme ve meta-analiz. BMJ Açık. 2016; 14 :e009675. doi: 10.1136/bmjopen-2015-009675. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Kawashima M., Yamatsuji M., Yokoi N., Fukui M., Ichihashi Y., Kato H., Nishida M., Uchino M., Kinoshita S., Tsubota K. Görsel ekran terminalinde kuru göz hastalığının taranması İşçilerin iş sağlığı muayeneleri sırasında: Moriguchi çalışması. J. İşgal. Sağlık. 2015; 57 :253–258. doi: 10.1539/joh.14-0243-OA. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        10. Uchino M., Yokoi N., Uchino Y., Dogru M., Kawashima M., Komuro A., Sonomura Y., Kato H., Kinoshita S., Schaumberg DA, ve diğerleri. Görsel ekran terminali kullanıcılarında kuru göz hastalığının yaygınlığı ve risk faktörleri: Osaka çalışması. Am. J. Oftalmol. 2013; 156 :759–766. doi: 10.1016/j.ajo.2013.05.040. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        11. Rossi GCM, Scudeller L., Bettio F., Pasinetti GM, Bianchi PE Video ekran terminali kullanıcılarında kuru gözün yaygınlığı: İtalya'da kesitsel bir Kafkas çalışması. Uluslararası Oftalmol. 2019; 39 :1315–1322. doi: 10.1007/s10792-018-0947-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        12. Rossi GCM, Pasinetti G., Scudeller L., Raimondi M., Lanteri S., Bianchi PE Tedavi edilen glokom veya oküler hipertansiyon hastalarında oküler yüzey hastalığı gelişmesi için risk faktörleri. Avro. J. Oftalmol. 2013; 23 :296–302. doi: 10.5301/ejo.5000220. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        13. Gonzalez-Perez M., Susi R., Antona B., Barrio A., Gonzalez E. Bilgisayarlı Görme Belirti Ölçeği (CVSS17): Geliştirme ve ilk doğrulama. Yatırım. Oftalmol. Vis. Bilim. 2014; 55 :4504–4511. doi: 10.1167/iovs.13-13818. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        14. Panossian AG Zihinsel ve davranışsal bozukluklarda adaptojenler. Psikiyatr. Klin. N. Am. 2013; 36 :49–64. doi: 10.1016/j.psc.2012.12.005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        15. Jacquet A., Grolleau A., Kove J., Lassalle R., Moore N. Tükenmişlik: Profesyonel farigue sendromu (tükenmişlik) için TARGET I'in etkinliğinin ve tolere edilebilirliğinin değerlendirilmesi J. Int. Med Res. 2015; 43 :54–66. doi: 10.1177/0300060514558324. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        16. Ripps H., Chappell RL İncelemesi: Çinkonun omurgalı retinasındaki işlevsel önemi. Mol. Vis. 2014; 20 :1067–1074. [ PMC ücretsiz makalesi ] [ PubMed ] [ Google Akademik ]
        17. Pescosolido N., Imperatrice B., Karavitis P. Yaşlanan göz ve L-karnitin ve türevlerinin rolü. İlaçlar. 2008; 9 :3–14. doi: 10.2165/0126839-200809001-00002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        18. Zafra-Stone S., Yasmin T., Bagchi M., Chatterjee A., Vinson JA, Bagchi D. İnsan sağlığı ve hastalıkların önlenmesinde yeni antopsidantlar olarak Berry antosiyaninleri. Mol. Nutr. Gıda Arş. 2007; 51 :675–683. doi: 10.1002/mnfr.200700002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        19. Canter PH, Ernst E. Gece görüşü için Vaccinium Mytillus'un (Yabanmersini) antosiyanositlenmesi - Plasebo kontrollü çalışmaların sistematik bir incelemesi. Hayatta kalma. Oftalmol. 2004; 49 :38–50. doi: 10.1016/j.survophthal.2003.10.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. Szczotka-Flynn LB, Maguire MG, Ying GS, Lin MC, Bunya VY, Dana R., Asbell PA Kuru Göz Değerlendirmesi ve Yönetimi (DREAM) Çalışma Araştırma Grubu. Kuru Gözün Görme Keskinliği ve Kontrast Hassasiyeti Üzerindeki Etkisi: Kuru Göz Değerlendirmesi ve Yönetimi Çalışması. Optimum. Vis. Bilim. 2019; 96 :387–396. doi: 10.1097/OPX.0000000000001387. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        21. Adams RJ, Courage ML Erken çocukluktan olgunluğa kadar insanın kontrast duyarlılığını ölçmek için tek bir testin kullanılması. Vizyon Arş. 2002; 42 :1205–1210. doi: 10.1016/S0042-6989(02)00038-X. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        22. Ross JE, Clarke DD, Bron AJ Yaşın kontrast duyarlılığı fonksiyonuna etkisi: Unioküler ve binoküler bulgular. br. J. Oftalmol. 1985; 69 :51–56. doi: 10.1136/bjo.69.1.51. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        23. Khoo HE, Azlan A., Tang ST, Lim SM Antosiyanidinler ve antosiyaninler: Gıda, farmasötik bileşenler ve potansiyel sağlık yararları olarak renkli pigmentler. Gıda Besinleri Res. 2017; 61 :1361779. doi: 10.1080/16546628.2017.1361779. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        24. Shim SH, Kim JM, Choi CY, Kim CY, Park KH Ginkgo biloba özü ve yaban mersini antosiyaninleri normal tansiyonlu glokomlu hastalarda görme fonksiyonunu iyileştirir. J. Med. Yiyecek. 2012; 15 :818–823. doi: 10.1089/jmf.2012.2241. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        25. Nakaishi H., Matsumoto H., Tominaga S., Hirayama M. Siyah frenk üzümü antisiyanosit alımının sağlıklı insanlarda karanlığa adaptasyon ve VDT çalışmasına bağlı geçici kırılma değişikliği üzerine etkileri. Alternatif. Med. Rev. 2000; 5 :553–562. [ PubMed ] [ Google Akademik ]
        26. Goncalves AC, Nunes AR, Falcao A., Alves G., Silva LR Antosiyaninlerin insan sağlığına diyet etkileri: Kapsamlı bir inceleme. Eczacılık. 2021; 14 :690. doi: 10.3390/ph14070690. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        27. Chi SC, Tuan HI, Kang YN Çoklu Doymamış Yağ Asitlerinin Spesifik Olmayan Tipik Kuru Göz Hastalığı Üzerindeki Etkileri: Randomize Klinik Araştırmaların Sistematik Bir İncelemesi ve Meta-Analizi. Besinler. 2019; 11 :942. doi: 10.3390/nu11050942. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        28. Yamashita SI, Suzuki N., Yamamoto K., Iio SI, Yamada T. MaquiBright®'ın insanlarda göz kuruluğu ve yorgunluğunun iyileştirilmesi üzerindeki etkileri : Randomize, çift kör, plasebo kontrollü bir çalışma. J. Gelenek. Tamamlayıcı. Med. 2019; 9 :172–178. doi: 10.1016/j.jtcme.2018.11.001. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        29. Pellegrini M., Senni C., Bernabei F., Cicero AFG, Vagge A., Maestri A., Scorcia V., Giannaccare G. Oküler Yüzey Hastalıklarında Beslenme ve Besin Takviyelerinin Rolü. Besinler. 2020; 12 :952. doi: 10.3390/nu12040952. [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
        Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

        Yorum yap


        • #5
          Akut Pankreatitte Çoklu Darbe: Metabolik Sendromun Bileşenleri Birbirlerinin Kötüleştirici Etkilerini Sinerjiye Dönüştürür

          Andrea Szentesi , 1, 2, 3 Andrea Párniczky , 1, 4 Áron Vincze , 5 Judit Bajor , 5 Szilárd Gódi , 6 Patricia Sarlós , 5 Noémi Gede , 1 Ferenc Izbéki , 7 Adrienn Halász , 7 Katalin Márta , 1 Dalma Dobszai , 1 , 3 Imola Török , 8 Hunor Farkas , 8 Mária Papp , 9 Márta Varga ,10 József Hamvas , 11 János Novák , 12 Artautas Mickevicius , 13, 14 Elena Ramirez Maldonado , 15 Ville Sallinen , 16 Dóra Illés , 2 Balázs Kui , 2 Bálint Erőss , 1 László Czakó , 2 Tamás Takács , 2 ve Péter Hegyi 1, 2 , 6, 17 , Macar Pankreas Çalışma Grubu
          Yazar bilgileri Makale notları Telif Hakkı ve Lisans bilgileri PMC Yasal Uyarı
          1 Translasyonel Tıp Enstitüsü, Szentágothai Araştırma Merkezi, Tıp Fakültesi, Pécs Üniversitesi, Pécs, Macaristan
          2 Birinci Tıp Bölümü, Szeged Üniversitesi, Szeged, Macaristan
          3 Klinik Tıp Doktora Okulu, Szeged Üniversitesi, Szeged, Macaristan
          4 Heim Pál Ulusal Pediatri Enstitüsü, Budapeşte, Macaristan
          5 Gastroenteroloji Bölümü, Birinci Tıp Anabilim Dalı, Tıp Fakültesi, Pécs Üniversitesi, Pécs, Macaristan
          6 Translasyonel Tıp Anabilim Dalı, Birinci Tıp Anabilim Dalı, Tıp Fakültesi, Pécs Üniversitesi, Pécs, Macaristan
          7 Fejér İlçesi Szent György Eğitim Hastanesi, Székesfehérvár, Macaristan
          8. İlçe Acil Klinik Hastanesi – Gastroenteroloji ve Tıp, Eczacılık, Bilim ve Teknoloji Üniversitesi, Târgu Mureş, Romanya
          9 Gastroenteroloji Bölümü, İç Hastalıkları Anabilim Dalı, Debrecen Üniversitesi, Debrecen, Macaristan
          10 Békés İlçesi Dr. Réthy Pál Hastanesi, Békéscsaba, Macaristan
          11 Bajcsy-Zsilinszky Hastanesi, Budapeşte, Macaristan
          12 Gastroenteroloji Bölümü, Békés İlçesi Pándy Kálmán Hastanesi, Gyula, Macaristan
          13 Vilnius Üniversite Hastanesi Santaros Kliniği, Vilnius, Litvanya
          14 Karın Cerrahisi, Nefroüroloji ve Gastroenteroloji Kliniği, Tıp Fakültesi, Vilnius Üniversitesi, Vilnius, Litvanya
          15 Consorci Sanitari del Garraf, Sant Pere de Ribes, Barselona, ​​İspanya
          16 Transplantasyon ve Karaciğer Cerrahisi Bölümü, Helsinki Üniversitesi Hastanesi ve Helsinki Üniversitesi, Helsinki, Finlandiya
          17 Macaristan Bilimler Akademisi – Szeged Üniversitesi, Momentum Gastroenteroloji Multidisipliner Araştırma Grubu, Szeged, Macaristan
          Düzenleyen: Richard T. Waldron, Cedars-Sinai Tıp Merkezi, Amerika Birleşik Devletleri
          İnceleyen: Juan Sastre, Valencia Üniversitesi, İspanya; Savio George Barreto, Medanta – İlaç, Hindistan
          *Yazışma: Péter Hegyi, moc.liamg@9002iygeh
          Bu makale Frontiers in Physiology dergisinin bir bölümü olan Gastrointestinal Sciences'a gönderildi. İlişkili Veriler

          Ek Malzemeler Veri Kullanılabilirliği Beyanı
          Şuraya git: Soyut

          giriiş
          Akut pankreatit (AP) insidansı ve metabolik sendromun (MetS) prevalansı dünya çapında artmaktadır. Çeşitli çalışmalar obezitenin (OB), hiperlipideminin (HL) veya diyabetin (DM) AP'deki ciddiyeti, mortaliteyi ve komplikasyonları artırabileceğini doğrulamıştır. Ancak MetS bileşenlerinin AP sonuçları üzerindeki bağımsız veya ortak etkisine ilişkin kapsamlı bilgi bulunmamaktadır. Amacımız (1) MetS bileşenlerinin AP sonucu üzerinde bağımsız bir etkisinin olup olmadığını anlamak ve (2) bunların kombinasyonlarının ortak etkisini incelemekti.

          Yöntemler
          2012'den 2017'ye kadar 28 merkezden 1435 AP vakası prospektif AP Kaydına dahil edildi. Hasta grupları OB, HL, DM ve hipertansiyon (HT) varlığına göre retrospektif olarak oluşturuldu. Birincil sonlanım noktaları mortalite, ciddiyet, AP komplikasyonları ve hastanede kalış süresiydi. %95 güven aralığına (CI) sahip olasılık oranı (OR) hesaplandı.

          Sonuçlar
          Analize 1257 hasta (55,7 ± 17,0 yıl) dahil edildi. OB varlığı böbrek yetmezliği için bağımsız bir prediktif faktördü [OR: 2,98 (CI: 1,33–6,66)] ve obez hastalar, obez olmayan hastalara kıyasla hastanede daha uzun süre geçirdi (12,1'e karşı 10,4 gün, p = 0,008 ) . HT, ciddi AP riskini [OR: 3,41 (CI: 1,39–8,37)], böbrek yetmezliğini [OR: 7,46 (CI: 1,61–34,49)] ve hastanede kalış süresini (11,8'e karşı 10,5 gün, p = 0,020 ) artırdı ). HL, lokal komplikasyon riskini [OR: 1,51 (CI: 1,10–2,07)], böbrek yetmezliğini [OR: 6,4 (CI: 1,93–21,17)] ve yeni teşhis edilen DM insidansını [OR: 2,55 (CI: 1,26) artırdı –5.19)]. DM varlığı ile AP sonucu arasında ilişki bulunamadı. 906 vaka (ortalama yaş ± SD): 56,9 ± 16,7 yıl) MetS'in dört bileşeninin tümüne ilişkin veriler mevcuttu. İki, üç veya dört MetS faktörünün varlığı, MetS faktörü olmayan hastalarla karşılaştırıldığında olumsuz sonuç görülme sıklığını artırdı.

          Çözüm
          OB, HT ve HL birçok komplikasyon için bağımsız risk faktörleridir. HT ciddiyet açısından da bağımsız bir risk faktörüdür. MetS'in bileşenleri birbirlerinin zararlı etkilerini güçlü bir şekilde sinerji haline getirir. AP'de MetS bileşenlerinin aranması ve takip edilmesi önemlidir.

          Anahtar Kelimeler: akut pankreatit, metabolik sendrom, obezite, diyabet, hipertansiyon, hiperlipidemi, şiddet, mortalite
          Şuraya git: giriiş


          Akut pankreatit, dünya çapında görülme sıklığı ve hastaneye yatışların arttığı ciddi bir inflamatuar durumdur ( Forsmark ve diğerleri, 2016 ; Garg ve diğerleri, 2019 ). AP'nin şiddeti hafif ve kendi kendini sınırlayandan şiddetli ve ölümcüle kadar değişen bir şiddettedir. Hastalığın mortalitesi yaklaşık %2 ila 5 arasında değişmektedir ve revize edilmiş Atlanta sınıflandırmasında özetlenen organ yetmezliği ve lokal komplikasyonların gelişimine bağlıdır ( Banks ve ark., 2013 ). Başlıca etiyolojik faktörler safra taşları ve alkol tüketimidir ( Forsmark ve ark., 2016 ), ancak hipertrigliseridemi (HTG) ve bazı ilaçların alımı da arka planda olabilir.

          AP'nin şiddeti ve sonucu, konağın metabolik komorbiditelerinden etkilenir ( Çalışma Grubu Iap/Apa Akut Pankreatit Kılavuzları, 2013 ; Goodger ve ark., 2016 ). Metabolik sendrom, abdominal OB, HTG, düşük seviyelerde yüksek yoğunluklu lipoprotein (HDL), kan basıncında ve açlık glikozunda artışlar veya diyabetin kümelenmesiyle karakterize edilir (Alberti ve diğerleri, 2009 ) . MetS, kardiyovasküler hastalık ve kronik böbrek hastalığının gelişmesi ve bunlardan ölüm riskinin artmasıyla ilişkilidir ( Isomaa ve diğerleri, 2001 ). MetS varlığının daha yüksek şiddetli AP riski, daha yüksek ölüm oranı ve yoğun bakım ünitesinde daha uzun kalış süresi ile ilişkili olduğu daha önce gösterilmiştir ( Mikolasevic ve ark., 2016).). Ancak başka bir çalışmada MetS AP'nin şiddetini etkilememiştir ( Savalhi ve ark. 2014 ). OB'nin daha önce bağımsız olarak AP'nin ciddiyeti ( Savalhi ve diğerleri, 2014 ) ve organ yetmezliği gelişimi ile ilişkili olduğu ancak AP'deki mortalite ile ilişkili olmadığı gösterilmiştir ( Smeets ve diğerleri, 2019 ). DM daha yüksek AP riski ile ilişkiliydi ( Yang ve ark., 2013 ) ve böbrek yetmezliği insidansını, yoğun bakım ünitesine kabulü ve hastanede kalış süresini (LOS) artırarak AP sonucunu olumsuz yönde etkiledi ( Miko ve ark. 2013). , 2018 ). HTG'nin varlığı AP'de ciddiyeti, komplikasyon oranını ve mortaliteyi artırdı ( Kiss ve ark., 2018 ).

          Ancak AP sonucu ile arteriyel HT varlığı arasında bir bağlantı olduğuna dair veri yoktur. Ayrıca MetS bileşenlerinin, yani OB, DM, HT ve HL'nin AP sonucunu tek tek veya kombinasyon halinde nasıl etkilediğine dair veri eksikliği vardır. Bu nedenle, bu çalışmada MetS bileşenlerinin AP sonucunu (1) ayrı ayrı ve (2) birlikte nasıl etkilediğini analiz etmeyi amaçladık.

          Şuraya git: Malzemeler ve yöntemler

          Hasta Popülasyonu ve Çalışma Tasarımı


          Macar Pankreas Çalışma Grubu tarafından 2011 yılında başlatılan APR, AP'den muzdarip hastalar için uluslararası ileriye dönük bir kayıttır. HPSG, pankreas kayıtlarının yanı sıra, AP'yi araştırmak için PREPAST ( Dubravcsik ve diğerleri, 2015 ), APPLE ( Parniczky ve diğerleri, 2016 ), PINEAPPLE ( Zsoldos ve diğerleri, 2016 ), GOULASH ( Marta ve diğerleri, 2017 ) ve EASY ( Hritz ve Hegyi, 2015 ) ve üç ön çalışma protokolü daha sunmuştur: GOULASH PLUS (GOULASH çalışmasının takibi), EMILY (hafif akut safra yollarında kolesistektomiyi geciktirmek için endoskopik sfinkterotomi). pankreatit) ve YAŞAM SÜRESİ (yaşam tarzı, korunma ve AP riski).

          Haziran 2012'den Eylül 2017'ye kadar 28 toplum ve üniversite hastanesinden AP'li 1435 yetişkin hasta prospektif olarak kaydedildi ( Ek Ek S1 ). Demografik ve antropometrik veriler; HL, HT ve DM öyküsü; önceki tıbbi tedavi ve etiyoloji; şiddet; lokal ve sistemik komplikasyonlar; ve AP mortalitesi toplandı.

          Bu çalışmada her bir etki analizi için vaka sayısını maksimuma çıkarmayı amaçladık. 1257 vakadan OB, 1127 vakadan HT, 1257 vakadan DM ve 1036 vakadan HL bilgisine ulaştık. Hastalar Dünya Sağlık Örgütü'nün (WHO) BMI sınıflandırmasına (≥30 veya <30 kg/ m2 ) ve diğer üç bileşenin (HT, HL ve DM) varlığına veya yokluğuna göre gruplandırıldı . Bununla birlikte, "ortak etki analizine" yalnızca MetS, OB, HL, HT ve DM'nin dört bileşeninden elde edilen verilerin mevcut olduğu vakaları dahil ettik (906 vaka). Yukarıda belirtilen kohortların 1435 vakanın toplam kohortunu temsil ettiğini doğrulamak için ek bir analiz gerçekleştirdik. Daha da önemlisi, kohortlar arasında demografik özelliklerde veya ana sonuç parametrelerinde anlamlı bir farklılık yoktu ( Ek Ek S2).

          Veriler, prospektif APR'de standartlaştırılmış bir vaka raporu formu ve protokolü temelinde eğitimli ve deneyimli çalışma yöneticilerinin yardımıyla tedavi eden hekimler tarafından toplandı. Kaydedilen verilerin doğruluğu, hem tıbbi idari personelin hem de gastroenterologların dahil olduğu dört seviyeli bir kalite kontrol sistemi ile güvence altına alınmaktadır. Veri kalitesi Ek Ek S3'te sunulmaktadır . Çalışma protokolü Tıbbi Araştırma Konseyi Bilimsel ve Araştırma Etik Kurulu (22254-1/2012/EKU) tarafından onaylandı. Tüm hastalar kayıtlara katılmak için yazılı bilgilendirilmiş onam verdi. Tanımlar


          AP tanısı IAP/APA kılavuzundaki önerilere göre konuldu. Aşağıdaki üç kriterden en az ikisi mevcuttu: üst karın ağrısı, üst normal seviyenin üç katından fazla pankreatik enzim seviyeleri ve görüntülemede pankreatit özellikleri (Çalışma Grubu Iap/Apa Akut Pankreatit Kılavuzları, 2013 ). AP'nin şiddeti ve komplikasyonları revize edilmiş Atlanta sınıflamasına göre belirlendi ( Banks ve ark., 2013 ). OB, BMI ≥30 kg/ m2 ise belirlendi ( Jensen ve ark., 2014)). Kan basıncının ≥140/90 mmHg olması veya antihipertansif ilaç kullanması durumunda HT belirlendi. HL, hiperkolesteroleminin varlığı veya düşük düzeyde HDL veya HTG varlığı ile tanımlandı. Açlık kolesterol düzeyi >200 mg/dL (5,2 mmol/L), HDL < 44 mg/dL (1,15 mmol/L; kadın) veya <35 mg/dL (0,9 mmol/L; erkek) olduğunda durum HL olarak kabul edildi. , trigliserit düzeyi 150 mg/dL'yi (1,7 mmol/L) aşmış veya hasta HL için ilaç tedavisi alıyordu. DM tanısı Amerikan Diyabet Derneği Kriterleri ( American Diabetes Association, 2010 ) doğrultusunda veya hastanın hiperglisemi için ilaç tedavisi alması durumunda konuldu.

          Birincil son noktalar AP ve LOS'un mortalitesi, ciddiyeti ve komplikasyonlarıydı. İstatistiksel Analizler


          Kategorik değişkenler için vaka sayıları ve yüzdeler, SD ile ortalama ve %25 ve %75 çeyreklik medyanlar (sırasıyla Q1 ve Q3) hesaplandı ve tanımlayıcı analizde sayısal değişkenler için aralıklar hesaplandı.

          İki bağımsız örnek grubunu karşılaştırmak amacıyla normal dağılan veriler için t testi ve normal dağılmayan veriler için Mann-Whitney U testi kullanıldı . Kategorik değişkenler arasındaki ilişki Ki-kare testi ve Bonferroni düzeltmeli Z testi ve %95 GA'lı OR'ler ile incelendi .

          MetS faktörlerinin ve yaşın bağımsız etkisini tanımlamak için lojistik regresyon kullanıldı. İki taraflı p değerinin <0,05 olması istatistiksel olarak anlamlı kabul edildi. Eksik veriler için mevcut durum analizi kullanıldı. İstatistiksel analizler SPSS 25.0 yazılımı (IBM Corporation) kullanılarak yapıldı.

          Şuraya git: Sonuçlar

          Bireysel Etki Analizi


          Toplam 1257 hasta (ortalama yaş ± SD : 55,7 ± 17,0 yıl, erkek vs. kadın: %57,1 vs. %42,9) "bireysel etki analizi" için çalışmaya alındı. Hastaların 371'i (%29,5) OB, 676'sı (%60,0) HT, 349'u (%33,7) HL ve 206'sı (%16,4) DM idi (tablo 1). TABLO 1


          Bireysel etki analizi.
          Toplam kohort Obezite ( n = 1257)
          Hipertansiyon ( n = 1127)
          Hiperlipidemi ( n = 1036)
          Şeker hastalığı ( n = 1257)
          OB dışı doğum günü HT olmayan HT HL olmayan HL DM olmayan DM
          N 1257 886 371 451 676 687 349 1051 206
          Gruplar içindeki % 70.5 29.5 40.0 60.0 66.3 33.7 83.6 16.4
          Yaş, cinsiyet, CCI
          Ortalama yaş 55.7 55.4 56.3 46.2 63,8 ∗ 56.4 54,0 ∗ 54.5 61,7 ∗
          SD (ortalama yaş) 17.0 17.7 15.2 15.2 14.1 17.8 14.5 17.3 13.9
          Erkek (%) 57.1 59.3 52.0 61.9 51.8 55.6 64,8 ∗ 56.4 60.7
          Dişi (%) 42.9 40.7 48,0 ∗ 38.1 48,2 ∗ 44.4 35.2 43.6 39.3
          Ortalama CCI 1.4 1.3 1.6 0,9 1.7 1.3 1.7 1.0 2.9
          SD (CCI) 1.6 1.6 1.7 1.4 1.7 1.6 1.8 1.4 1.7
          Etiyoloji (%)
          Safra yolu 37.8 33.6 47,7 ∗ 31.3 44.1 41.3 26.4 38.2 35.9
          Alkollü 18.5 21.1 12.1 20.2 12.4 21.4 17.2 19.0 15.5
          HTG kaynaklı 3.7 3.0 5.4 3.3 3.7 0,1 12,9 ∗ 2.8 8,7 ∗
          Alkolik + HTG kaynaklı 1.8 1.9 1.6 1.6 1.9 0,0 6.6 1.8 1.9
          ERCP sonrası 2.6 3.0 1.6 3.1 2.8 2.9 0,9 2.6 2.9
          Kombine 8.0 7.1 10.0 11.1 7.0 7.7 7.2 7.9 8.3
          İdiyopatik 20.5 22.0 17.0 21.5 20.7 18.8 23.8 20.6 20.4
          Diğer 7.1 8.1 4.6 8.0 7.4 7.7 5.2 7.2 6.3
          Şiddet, mortalite, LOS
          Hafif (%) 69.6 69.9 69.0 70.1 69.5 73.5 64,2 ∗ 69.7 68.9
          Ilıman (%) 25.1 26.1 22.6 26.8 23.4 22.1 29.5 24.9 25.7
          Haşin (%) 5.3 4.1 8,4 ∗ 3.1 7.1 ∗ 4.4 6.3 5.3 5.3
          Ölüm oranı (%) 2.4 2.1 3.0 1.3 3.1 2.3 1.4 2.5 1.9
          Ortalama LOS 10.9 10.4 12.1 ∗ 10.5 11,8 ∗ 10.5 11.4 10.7 11.8
          SD (LOS) 9.3 8.6 10.6 7.9 10.1 9.0 10.3 9.0 10.6
          Komplikasyonlar (%)
          Lokal komplikasyonlar 29.0 28.6 30.2 29.5 28.3 25.3 34,7 ∗ 29.1 28.6
          Sıvı toplama 25.0 24.7 26.7 23.9 25.3 22.1 29,8 ∗ 24.9 27.2
          Psödokist 7.6 7.8 7.3 6.9 9.3 6.0 10,6 ∗ 7.6 7.8
          Nekroz 8.0 7.1 10.2 7.8 8.0 8.2 8.9 8.3 6.8
          Yeni başlayan diyabet 3.8 3.5 4.6 2.7 4.1 3.6 5.2 4.6 Yok
          Sistemik komplikasyonlar 7.6 6.0 11,3 ∗ 3.8 10.1 ∗ 6.6 9.5 7.0 10.2
          Solunum yetmezliği 4.6 3.5 7,3 ∗ 2.0 6.1 ∗ 4.5 4.9 4.1 7.3
          Kalp yetmezliği 1.8 1.4 3.0 0,7 2,5 ∗ 1.9 2.0 1.9 1.5
          Böbrek yetmezliği 2.7 1.4 5,9 ∗ 0,7 4.1 ∗ 2.2 4,6 ∗ 2.8 2.4
          Ayrı bir pencerede aç
          Çalışma popülasyonunun tanımı. AP'nin demografisi, etiyolojisi ve sonucu. Önemli ölçüde farklı değerler, kalın rakamlarla ve yıldız işaretiyle işaretlenmiştir. İstatistiksel analiz Ek Ek S4'te özetlenmiştir .
          AP'nin ana etiyolojileri, toplam vakaların %37,8'inde safra taşları, %18,5'inde alkol ve %3,7'sinde HL idi. OB biliyer etiyoloji riskini artırdı [OR: 2,06 (CI: 1,61–2,64)]. Bu arada, HTG'nin indüklediği AP, HL olmayan gruba kıyasla HL varlığında (%12,9'a karşı %0,1, p < 0,001) ve DM olmayan hasta grubuna kıyasla DM varlığında daha sıktı [OR: 2,34 (GA: 1,39–4,00)], sırasıyla (tablo 1).

          Obezite (Şekil 1)

          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fphys-10-01202-g001.jpg
          ŞEKİL 1
          Bireysel etki analizi. OB ve AP'nin sonucu. (A) OB grubunda erkek hastaların payı daha düşüktü [ ∗ OR: 0,75 (CI: 0,58–0,95)]. (B) OB ve OB olmayan gruplar arasında ortalama yaş açısından fark yoktur ( p = 0,398). (C) Obez hastalarda şiddetli AP riski iki kattan fazladır [ ∗ OR: 2,15 (CI: 1,31–3,54)]. (D) Obez hastaların ölüm riski daha yüksek değildi. (E) Obez hastalar hastanede daha fazla zaman geçirdi ( ∗ p = 0,008). (F) OB grubunda daha fazla lokal komplikasyon gözlendi, ancak fark anlamlı değildi. (G)Obez hastalarda sistemik komplikasyon [ ∗ OR: 1,99 (CI: 1,30–3,05)], solunum yetmezliği [ ∗ OR: 2,15 (CI: 1,26–3,65)] ve böbrek yetmezliği [ ∗ OR: 4,56 (CI riski daha yüksekti 2.23–9.32)].

          Obezite erkeklerde daha az yaygındı [OR: 0,75 (CI: 0,58-0,95)]. OB'li ve OB'li olmayan grupların yaşları arasında fark yoktu (56,3 ± 15,2'ye karşı 55,4 ± 17,7, p = 0,398), ancak yaş dağılımı ileri yaş gruplarında obez hastaların daha büyük bir oranını gösteriyordu.

          Obezite şiddetli AP riskini artırdı [OR: 2,15 (CI: 1,31–3,54)] ancak ölüm oranıyla hiçbir ilişki göstermedi [OR: 1,39 (CI: 0,66–2,96)]. OB lokal komplikasyon insidansını etkilemedi (Şekil 2F) ancak sistemik komplikasyon [OR: 1,99 (CI: 1,30–3,05)] ve solunum [OR: 2,15 (CI: 1,26–3,65)] ve böbrek [OR: 4,56 (CI: 2,23–9,32)] yetmezliği riskini artırdı AP'de. Obez hastalar hastanede daha uzun süre kaldı (12,1'e karşı 10,4 gün, p = 0,008) (Şekil 2G).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fphys-10-01202-g002.jpg
          ŞEKİL 2
          Bireysel etki analizi. HT ve AP'nin sonucu. (A) HT'li erkek hasta sayısı daha azdır [ ∗ OR: 0,66 (CI: 0,52–0,84)]. (B) HT'li hastalar, olmayan hastalara göre daha yaşlıdır ( ∗ p < 0,001). (C) Hipertansif hastalarda AP'nin şiddetli formuna yakalanma riski iki kattan fazladır [ ∗ OR: 2,39 (CI: 1,30–4,38)]. (D) HT grubunda mortalite riski daha yüksek değildi. (E) HT'li hastalar hastanede daha fazla zaman geçirdi ( ∗ p = 0,020). (F)Aradaki fark anlamlı olmasa da, sıvı toplanması, psödokistler ve yeni başlayan diyabet insidansı daha yüksekti. (G) Hipertansif hastalarda sistemik komplikasyon riski [ ∗ OR: 2,83 (CI: 1,64–4,88)], solunum yetmezliği [ ∗ OR: 3,14 (CI: 1,51–6,52)], kalp yetmezliği [ ∗ OR: 3,82 CI) daha yüksektir : (1,11–13,11)] ve böbrek yetmezliği [ ∗ OR: 6,40 (CI: 1,93–21,17)].

          Bağımsız etki


          Lojistik regresyon, OB'nin böbrek yetmezliği için bağımsız bir prediktif faktör olduğunu ortaya çıkardı [OR: 2,98 (CI: 1,33–6,66)] (Tablo 2). TABLO 2


          Yaş dahil MetS bileşenlerinin lojistik regresyondaki bağımsız etkisi.
          MetS bileşeni Sonuç parametresi VEYA %95 GA
          Şiddet 1.38 0,73–2,58
          Ölüm oranı 1.06 0,38–2,96
          Lokal komplikasyonlar 0,99 0,72–1,37
          Sıvı toplama 1.05 0,75–1,48
          Psödokist 0,85 0,50–1,44

          doğum günü Nekroz 1.48 0,89–2,45
          Yeni diyabet başlangıcı 1.52 0,73–3,14
          Sistemik komplikasyon 1.35 0,79–2,30
          Solunum yetmezliği 1.52 0,77–3,02
          Kalp yetmezliği 2.45 0,88–6,78
          Böbrek yetmezliği 2.98 1.33–6.66
          Şiddet 3.41 1.39–8.37
          Ölüm oranı 4.50 0,91–22,20
          Lokal komplikasyonlar 1.22 0,85–1,75
          Sıvı toplama 1.42 0,97–2,08
          Psödokist 1.55 0,85–2,81

          HT Nekroz 1.36 0,76–2,43
          Yeni diyabet başlangıcı 1.56 0,66–3,65
          Sistemik komplikasyon 2.64 1.27–5.51
          Solunum yetmezliği 1.59 0,63–4,00
          Kalp yetmezliği 1.41 0,36–5,54
          Böbrek yetmezliği 7.46 1.61–34.49
          Şiddet 1.40 0,73–2,67
          Ölüm oranı 0.61 0,19–2,00
          Lokal komplikasyonlar 1.51 1.10–2.07
          Sıvı toplama 1.32 0,94–1,84
          Psödokist 1.58 0,95–2,61

          HL Nekroz 1.06 0,63–1,78
          Yeni diyabet başlangıcı 2.55 1.26–5.19
          Sistemik komplikasyon 1.34 0,77–2,32
          Solunum yetmezliği 0,90 0,43–1,90
          Kalp yetmezliği 1.59 0,54–4,67
          Böbrek yetmezliği 1.93 0,85–4,38
          Şiddet 0,48 0,20–1,16
          Ölüm oranı 0,46 0,10–2,14
          Lokal komplikasyonlar 0,84 0,56–1,28
          Sıvı toplama 1.02 0,67–1,56
          Psödokist 1.01 0,53–1,91

          DM Nekroz 0,53 0,24–1,14
          Yeni diyabet başlangıcı Yok Yok
          Sistemik komplikasyon 0,92 0,48–1,74
          Solunum yetmezliği 1.48 0,68–3,20
          Kalp yetmezliği 0.32 0,07–1,53
          Böbrek yetmezliği 0,43 0,15–1,22
          Ayrı bir pencerede aç
          OB böbrek yetmezliği için bağımsız bir prediktif faktördür; Ciddiyet için HT; ve lokal komplikasyonlar ve yeni bir diyabet tanısı için sistemik komplikasyonlar, böbrek yetmezliği ve hiperlipidemi. VEYA, olasılık oranı; GA, güven aralığı. İstatistiksel olarak anlamlı değerler (CI'li OR'ler) kalın rakamlarla işaretlenmiştir.
          Hipertansiyon (şekil 2)


          HT'li hastalar ortalama 17,6 yaş daha yaşlıydı (63,8 ± 14,1 vs. 46,2 ± 15,2, p < 0,001). Erkek cinsiyet daha düşük HT riskiyle ilişkiliydi [OR: 0,66 (CI: 0,52-0,84)].

          Hipertansiyon şiddetli AP [OR: 2,39 (CI: 1,30–4,38)], sistemik komplikasyon [OR: 2,83 (CI: 1,64–4,88)] ve solunum [OR: 3,14 (CI: 1,51–6,52)] risklerini artırdı, kalp [OR: 3,82 (CI: 1,11–13,11)] ve böbrek yetmezliği [OR: 6,40 (CI: 1,93–21,17)]. HT ayrıca daha uzun hastanede kalışla da ilişkiliydi (11,8'e karşı 10,5 gün, p = 0,020) (Şekil 3E).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fphys-10-01202-g003.jpg
          FİGÜR 3
          Bireysel etki analizi. HL ve AP'nin sonucu. (A) HL'li erkek hasta sayısı daha fazladır [ ∗ OR: 1,47 (CI: 1,12–1,92)]. (B) HL'li hastalar, olmayan hastalara göre daha gençtir ( ∗ p < 0,001). (C) Hiperlipidemik hastaların hafif AP geçirme şansı daha düşüktür [ ∗ OR: 0,65 (CI: 0,49-0,85)]. (D) HL hastalarında mortalite riski daha yüksek değildi. (E) HL'li hastalar hastanede daha fazla zaman geçirdi ( ∗ p = 0,053). (F) HL, lokal komplikasyon riskini artırır [ ∗ OR: 1,55 (CI: 1,17–2,05)], akut sıvı toplanması [∗ OR 1,48 (CI: 1,11–1,99)] ve psödokistler [ ∗ OR 1,81 (CI: 1,14–2,88)]. (G) Hiperlipidemik hastaların böbrek yetmezliği riski daha yüksektir [ ∗ OR 2,17 (CI: 1,51–4,43)].

          Bağımsız etki


          Lojistik regresyon, HT'nin ciddiyet [OR: 3,41 (CI: 1,39–8,37)], sistemik komplikasyonlar [OR: 2,64 (CI: 1,27–5,51)] ve böbrek yetmezliği [OR: 7,46 (CI: 1,61) için öngörücü bir faktör olduğunu ortaya çıkardı. –34.49)] ayrıca (Tablo 2).

          Hiperlipidemi (Figür 3)


          OB ve HT'nin aksine, HL daha genç yaşla (54,0 ± 14,5'e karşı 56,4 ± 17,8, p = 0,032) ve erkek hastalarda daha yüksek oranla ilişkiliydi [OR: 1,47 (CI: 1,12–1,92)].

          HL'li hastalarda hafif AP'ye sahip olma şansı daha düşüktü [OR: 0,64 (CI: 0,49-0,85)], ancak HL'nin mortalite üzerinde anlamlı bir etkisi yoktu. HL lokal komplikasyon riskini artırdı [OR: 1,55 (CI: 1,17–2,05)] ve lokal komplikasyonlar arasında akut sıvı koleksiyonları ve psödokist oluşumu daha sıktı [OR: 1,48 (CI: 1,11–1,99); VEYA: 1,81 (sırasıyla GA: 1,14–2,88). HL ayrıca böbrek yetmezliği riskini de artırdı [OR: 2,17 (CI: 1,06–4,43)].

          Bağımsız etki


          Lojistik regresyon, HL'nin lokal komplikasyonlar [OR: 1,51 (CI: 1,10–2,07)] ve yeni DM tanısı [OR: 2,55 (CI: 1,26–5,19)] için bağımsız bir prediktif faktör olduğunu ortaya çıkardı (Tablo 2).

          Şeker hastalığı (Şekil 4)

          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fphys-10-01202-g004.jpg
          ŞEKİL 4
          Bireysel etki analizi. DM ve AP'nin sonucu. (A) İki grup arasında cinsiyet açısından anlamlı bir fark yoktur. (B) Diyabetli hastalar diyabetsiz hastalara göre daha yaşlıdır ( ∗ p < 0,001). (C,D) Diyabetik hastalarda orta şiddette veya şiddetli AP veya mortalite riski bizim kohortumuzda daha yüksek değildi. (E) İki grup arasında LOS açısından fark yoktur ( p = 0,139). (F,G) Lokal veya sistemik komplikasyonlar açısından kohortumuzda diyabetli ve diyabetik olmayan hastalar arasında fark yoktur.

          DM'li hastalar daha yaşlıydı (61,7 ± 13,9'a karşı 54,5 ± 17,3, p < 0,001), DM'li ve DM olmayan gruplar arasında cinsiyet oranında fark yoktu [OR: 1,19 (CI: 0,88–1,62)] ( Ek Ek S4 ). İstatistiksel analizler DM ile AP'nin ciddiyeti, mortalitesi ve komplikasyonları arasında anlamlı bir ilişki olmadığını gösterdi. Ortak Etki Analizi


          Kohortumuzdaki toplam 906 hasta (ortalama yaş ± SD : 56,9 ± 16,7 yıl, erkek vs. kadın: %57,3 vs. %42,7) "ortak etki analizi" için uygundu. Hastaların 189'unda (%20,9) hiçbir MetS bileşeni yoktu, 294'ünde (%32,5) OB, 560'ında (%61,8) HT, 316'sında (%34,9) HL ve 162'sinde (%17,9) DM vardı. Sahip oldukları faktör kombinasyonlarına göre hasta grupları oluşturduk ve farklı faktör kombinasyonları ile MetS faktörü olmayan grup arasındaki sonuç parametrelerini tek tek karşılaştırdık ( Ek Ek S5 ). İki, üç veya dört MetS faktörünün varlığı, daha kötü sonuç parametrelerinin oranını sırasıyla %9,5, %24,1 ve %66,7 oranında anlamlı şekilde artırdı (Şekil 5).
          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fphys-10-01202-g005.jpg
          ŞEKİL 5
          Ortak etki analizi. MetS faktör kombinasyonlarının AP sonucuna etkisi. MetS faktörleri ne kadar fazla olursa, farklı sonuç parametrelerinin insidansı da o kadar anlamlı derecede yüksek gözlemlenebilir. İstatistiksel analiz Ek Ek S5'te özetlenmiştir .

          Şuraya git: Tartışma

          Bulguların özeti


          Sonuçlarımız ileriye dönük olarak toplanan vakalardan oluşan geniş bir veritabanında MetS bileşenlerinin AP sonucunu kötüleştirdiğini gösterdi. OB'nin böbrek yetmezliği için bağımsız bir risk faktörü olduğu ve daha uzun hastanede kalış süresiyle ilişkili olduğu gösterildi. HT'nin AP'nin şiddeti için bağımsız bir risk faktörü olduğu ve böbrek yetmezliği riskini artırdığı, HT'li hastaların ise hastanede daha uzun süre kaldığı kanıtlandı. HL, lokal komplikasyon, böbrek yetmezliği ve yeni DM tanısı riskini artırdı. Önceden var olan DM AP sonucunu değiştirmedi. Çalışmamız, hastalarda MetS bileşenleri ne kadar fazlaysa, daha kötü sonuç parametrelerinin oranının da o kadar yüksek olduğunu gösterdi.

          AP insidansı artmaktadır ve bu kısmen, her ikisi de AP'ye neden olan safra taşı oluşumunu uyaran ve HL'yi artıran OB'nin artan prevalansından kaynaklanmaktadır ( Yadav ve Lowenfels, 2013 ; Bonfrate ve ark., 2014 ). Aslında çalışmamızdaki toplam kohorta kıyasla obez hastalarda biliyer AP daha sıktı.

          Bugüne kadar çeşitli kohort çalışmaları ve sistematik bir inceleme, OB'nin AP'de lokal ve sistemik komplikasyonların ciddiyetini, mortalitesini ve oluşumunu arttırdığını bildirmiştir. Ancak bu sonuçlar OB ile AP'deki sonuçlar arasındaki bağlantı konusunda çelişkilidir ( Dobszai ve diğerleri, 2019 ). Bu çelişkinin nedeni, derlenen çalışmaların çoğunun düzeltilmemiş analizler bildirmesi olabilir; bu nedenle OB'nin AP'de bağımsız bir prognostik faktör olup olmadığı açıklığa kavuşturulamaz ( Dobszai ve ark., 2019 ). Karıştırıcı faktörlerin ayarlandığı güncel bir bireysel hasta verileri meta-analizinde OB, bağımsız olarak AP'de organ yetmezliği ve çoklu organ yetmezliği gelişimi ile ilişkilendirildi; ancak OB ile mortalite, nekroz ve müdahale arasında bir ilişki yoktu (Premkumar ve diğerleri, 2015 ). Bu veriler, OB'nin böbrek yetmezliği için bağımsız bir prediktif faktör olduğunun gösterildiği ancak mortalite oranını değiştirmediği sonuçlarımızla uyumludur (Tablo 2).

          OB'nin daha yüksek böbrek yetmezliği riski ile ilişkili olduğu olası bir mekanizma lipotoksisitedir.

          Obezite, yüksek düzeyde intrapankreatik yağ ve pankreası çevreleyen yüksek iç organ yağıyla ilişkilidir ( Smeets ve diğerleri, 2019 ). Bu hipotez deneysel verilerle de desteklenmektedir. Uzun süreli yüksek yağlı diyet, pankreas asiner hücrelerinde yağ birikmesi yoluyla asiner hücre hasarına ve pankreas fibrozuna neden oldu ( Matsuda ve diğerleri, 2014 ). Metabolik ve inflamatuar süreçlere neden olabilen intrapankreatik yağın da OB ile ilişkili olduğu öne sürülmektedir ( Majumder ve ark., 2017).). Ek olarak, intrapankreatik yağ varlığında, AP sindirici adipositlerde pankreatik lipazlar salınır, bu da doymamış yağ asitlerinin dolaşıma çıkışına neden olur; toksiktirler ve proinflamatuar aracılar olarak hareket edebilirler ve sistemik inflamasyon ve organ yetmezliğinin gelişiminde rol oynarlar ( Navina ve ark., 2011 ).

          Çalışmamızda hipertansiyon bağımsız olarak AP'nin şiddeti ve böbrek yetmezliği oranıyla ilişkiliydi. Bildiğimiz kadarıyla hiçbir çalışma arteriyel HT'nin AP sonuçları üzerindeki etkisini analiz etmemiştir. HT'nin AP sonuçlarını kötüleştirmesinin altında yatan mekanizmalar belirsizdir. Sempatik sinir sisteminin kan basıncı yükselmesini yükseltici olarak görev yapabileceği ve HT'ye bağlı komplikasyonların gelişiminde rol oynayabileceği öne sürülmüştür. Sempatik aktivasyon, vasküler hipertrofinin ve yeniden yapılanmanın gelişimini ve ilerlemesini destekler ve arteriyel genişleyebilirliğin ve vasküler uyumun bozulmasına katkıda bulunur ( Seravalle ve ark., 2014).). Hiperadrenerjik durumun varlığı ve arterlerdeki mikrovasküler ve makrovasküler yapısal değişiklikler, HT'nin kötüleştirici etkilerinden sorumlu olabilir ( Smits ve van Geenen, 2011 ).

          Çalışmamızda önceden var olan HL'nin lokal komplikasyonlar ve böbrek yetmezliği ile bağımsız olarak ilişkili olduğu gösterilmiştir. Sonuçlarımız, HTG varlığının böbrek yetmezliği riskini önemli ölçüde artırdığını ancak AP'de ölüm riskini artırmadığını bildiren yeni bir meta-analizin sonuçlarıyla uyumludur (Kiss ve ark., 2018 ) . Bununla birlikte HTG, bu meta-analizde ciddi AP riskini de önemli ölçüde artırdı ( Kiss ve ark., 2018)) HL ise çalışmamızda şiddetli AP riskini artırmadı. Bu tutarsızlık şu gerçeğiyle açıklanabilir: (1) meta-analize dahil edilen çalışmaların çoğunun düzeltilmemiş bir analiz rapor etmesi ve dolayısıyla HTG'nin AP'deki bağımsız etkisinin açıklanamaması; ve (2) çalışmamızdaki HL grubu hiperkolesterinemi ve/veya HTG'li hastaları içerirken meta-analize yalnızca HTG'li hastalar dahil edildi. HL'nin AP'de lokal ve sistemik komplikasyonları arttırdığı olası bir mekanizma, pankreas lipazları tarafından doymamış yağ asidinin oluşumu ve toksik etkisidir. Ayrıca HTG durumunda şilomikron konsantrasyonu da yükselir. Sonuç olarak kanın viskozitesi artar, dolayısıyla kan akışı bozulur ve pankreas iskemisine ve asidoza neden olur ( Pedersen ve ark., 2016 ).

          Ekzokrin ve endokrin pankreas arasında özel bir ilişki vardır. Deneysel veriler, insülinin pankreatit sırasında asiner hücreler üzerinde lokal koruyucu etkiye sahip olduğunu göstermektedir. l -argininin neden olduğu pankreatit, ekzokrin pankreasın büyük bölümünde şiddetli asiner hücre nekrozuna neden olur. Ancak Langerhans adacıklarının çevresinde bulunan asiner hücreler tamamen bozulmadan kalır ( Hegyi ve diğerleri, 1997 ). Ek olarak, AP indüksiyonundan önce beta hücrelerinin streptozotosin tedavisi ile yok edilmesi durumunda, lokal olarak görülebilen bu koruyucu etkinin, eksojen insülin uygulamasından bağımsız olarak ortadan kaybolduğunu da doğruladık (Taracs ve diğerleri, 2001) .). Maalesef kayıt defteri analizlerimizde insülinin lokal etkilerini araştıramadık. Burada, önceden var olan DM'nin, kohortumuzda AP'deki ciddiyeti, mortaliteyi veya komplikasyon oranını önemli ölçüde etkilemediğini gösterdik. Kohortumuzun anlamlı bir fark belirlemek için yeterince büyük olmadığını varsaydık. Yakın zamanda 354.880 vakanın analizi yapıldığında DM'nin hem lokal hem de sistemik komplikasyonları önemli ölçüde artırdığı bir meta-analiz yayınladık ( Miko ve ark., 2018 ). Ancak bu sayıdaki hastayı tek bir grupta toplamak kesinlikle imkansızdır. Ayrıca, yoğun bakım ünitesindeki ölüm oranı, DM olmayan hastalarda ortalama kan şekeri konsantrasyonunun artmasıyla önemli ölçüde arttı, ancak DM hastalarında bu artış olmadı ( Egi ve ark., 2008 ;Pedersen ve diğerleri, 2016 ). Sonuçlarımızla uyumlu olarak, DM'li kritik hastaların mortalitesi DM olmayan hastalara göre daha yüksek değildi ( Whitcomb ve ark., 2005 ).

          Çalışmamızda ileri yaşın akciğer ve kalp yetmezliği ile bağımsız olarak ilişkili olduğu gösterilmiştir (1).Tablo 2B). İleri yaş, AP'de ciddiyet ve mortalitenin bir belirteci olarak kapsamlı bir şekilde araştırılmıştır ve APACHE II skoruna, Ranson skoruna, AP'de Bedside Index of Severity in AP (BISAP) skoruna ve Japon Şiddet Skoruna (JSS) bir ciddiyet belirteci olarak dahil edilmiştir. ( Graham ve diğerleri, 2010 ). Bununla birlikte, komorbid hastalıklara göre düzeltme yapıldıktan sonra, yakın zamanda yapılan prospektif, çok merkezli bir çalışmada yalnızca çok aşırı yaş (>85 yaş), 30 günlük yatan hasta mortalitesi ve kalıcı organ yetmezliği ile ilişkilendirildi (Mounzer ve ark., 2012 ) . Sonuçlarımız, yaşlı hastaların sistemik komplikasyon geliştirme riskinin önemli ölçüde daha yüksek olduğunu ve bu gruptaki yüksek mortalitenin ciddi eşlik eden hastalıkların etkisinden kaynaklandığını tespit eden yeni bir kohort analiziyle uyumludur (Szakacs ve ark., 2018 ) . TABLO 3


          Lojistik regresyon.
          Şiddet 1.01 0,99–1,03
          Ölüm oranı 1.02 0,98–1,05
          Lokal komplikasyonlar 0,99 0,98–1,00
          Sıvı toplama 0,99 0,98–1,00
          Psödokist 1.00 0,98–1,01
          Yaş Nekroz 0,99 0,97–1,00
          Yeni diyabet başlangıcı 1.01 0,99–1,04
          Sistemik komplikasyon 1.01 0,99–1,03
          Solunum yetmezliği 1.03 1.01–1.06
          Kalp yetmezliği 1.05 1.01–1.09
          Böbrek yetmezliği 1.00 0,97–1,03
          Ayrı bir pencerede aç
          Çalışmamızda ileri yaşın solunum ve kalp yetmezliği ile bağımsız olarak ilişkili olduğu gösterilmiştir. İstatistiksel olarak anlamlı değerler (CI'li OR'ler) kalın rakamlarla işaretlenmiştir.
          AP'li hastalarda sıklıkla AP atağı sırasında ve sonrasında diyabet gelişir ( Moran ve ark., 2018 ); ancak DM riski tam olarak değerlendirilmemiştir. AP'nin şiddeti, etiyolojisi ve bireylerin yaşı ve cinsiyeti, AP'de yeni teşhis edilen diyabetin gelişiminde minimal etkiye sahipti ( Moran ve ark., 2018 ). HL'nin AP'de yeni teşhis edilen DM gelişimi için bağımsız bir risk faktörü olduğunu gösterdik. Yüksek kolesterol ve trigliserit düzeyleri, daha önceki çalışmalarla desteklenen bir bulgu olan DM riskini artırır ( von Eckardstein ve Sibler, 2011 ; Das ve diğerleri, 2014).). Dislipideminin neden olduğu DM'ye yatkınlığın AP sırasında ortaya çıktığını varsayabiliriz. Bu bulgu HL'li AP hastalarında DM için kapsamlı bir taramanın gerekliliğini vurgulamaktadır. Ayrıca, hiperglisemi pankreatik yıldız hücrelerinin çoğalmasını ve kollajen sekresyonunu uyardığı, hipoinsülinemi ise asiner hücre büyümesini ve pankreatik enzimlerin sentezini inhibe ettiği ve dolayısıyla pankreasın fibrozisini kolaylaştırdığı ve kronik pankreatite neden olabileceği için tüm AP hastaları DM açısından takip edilmeli ve taranmalıdır (Czako) . ve diğerleri, 2009 ). Güçlü Yönler ve Sınırlamalar


          Bu çalışmanın temel gücü, üçüncül ve üçüncül olmayan merkezler de dahil olmak üzere birçok ülkedeki hastanelerden ileriye dönük olarak toplanan vakalardan oluşan geniş bir örneklem büyüklüğüne sahip olmasıdır. Ayrıca, karıştırıcı değişkenleri kontrol etmek için bir lojistik regresyon analizi uygulandı ve MetS bileşenlerinin bağımsız prognostik faktörleri AP için analiz edildi. Son olarak çalışmamız, AP sonucu ile arteriyel HT varlığı arasındaki ilişkiyi bildiren ve MetS bileşenlerinin kombine varlığının AP sonucu üzerindeki etkisini analiz eden ilk çalışmadır.

          Bu çalışmanın sınırlamaları vardır. Birincisi, APR gözlemsel bir çalışma olmayıp çok merkezli prospektif bir kayıt olduğundan, bulgularımız kafa karıştırıcı faktörlerden veya seçim yanlılığından etkilenmektedir. İkincisi, çalışma tasarımımız kesitseldir, dolayısıyla çalışmamızda gözlemlenen ilişkilerin yönüne ilişkin herhangi bir nedensel müdahaleyi engellemektedir; bu nedenle uzun vadeli klinik sonuçlar değerlendirilemedi. Bu nedenle gelecekte uzun dönemli prospektif çalışmalara ihtiyaç vardır. Üçüncüsü, çalışmamız HTG'nin değil HL'nin etkisini değerlendirdi, dolayısıyla MetS tanımına tam olarak uymuyor. Dördüncüsü, peripankreatik sıvı birikimleri modifiye Atlanta sınıflamasına göre her zaman yeterince tanımlanamamıştır. Akut sıvı toplanması ve akut nekrotik sıvı toplanması, psödokistler, ve duvarlı pankreas nekrozu her zaman ayırt edilemedi çünkü tüm olgularda abdominal BT yapılmadı. Bu nedenle kesin bir duvarı olmayan peripankreatik sıvı koleksiyonlarına akut sıvı koleksiyonları, duvarlı olanlarına ise psödokist adı verildi.

          Şuraya git: Çözüm


          Sonuç olarak MetS bileşenleri AP sonucunu kötüleştirmektedir. OB, HT ve HL birçok komplikasyon için bağımsız risk faktörleridir. HT ciddiyet açısından da bağımsız bir risk faktörüdür. MetS'in unsurları ne kadar fazla olursa komplikasyon riski de o kadar yüksek olur. AP'de MetS bileşenlerinin aranması ve takip edilmesi önemlidir.

          Şuraya git: Veri kullanılabilirliği


          Bu çalışma için oluşturulan tüm veri kümeleri yazıya ve/veya Ek Dosyalara dahil edilmiştir .

          Şuraya git: Etik Beyanı


          Çalışma protokolü Tıbbi Araştırma Konseyi Bilimsel ve Araştırma Etik Kurulu (22254-1/2012/EKU) tarafından onaylandı. Tüm hastalar çalışmaya katılmak için yazılı bilgilendirilmiş onam verdi.

          Şuraya git: Yazar Katkıları


          AS, AP ve PH araştırmanın tasarımına katkıda bulundu. AP, ÁV, JB, SG, PS, FI, AH, IT, HF, MP, MV, JH, JN, AM, EM, VS, LC ve TT verileri topladı. AP, KM, DD, DI ve BK veri kalitesini değerlendirdi. NG ve AS verileri işleyerek analizi gerçekleştirdi. Rakamları AS ve PH tasarladı. AS, LC ve BE taslağın taslağını hazırladı. PH çalışmayı denetledi ve koordine etti. Tüm yazarlar sonuçları tartıştı ve makale hakkında yorum yaptı.

          Şuraya git: Çıkar Çatışması Beyanı


          Yazarlar, araştırmanın potansiyel çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişkinin bulunmadığı bir ortamda gerçekleştirildiğini beyan etmektedir.

          Şuraya git: Teşekkür


          Yazarlık politikasına uymayan katkıda bulunan araştırmacılara teşekkür ederiz. Bu merkezler, Ortak Saint Istvan ve Saint Laszlo Hastaneleri (Budapeşte, Macaristan), Cerrahi Enstitüsü, Debrecen Üniversitesi (Debrecen, Macaristan), Bács-Kiskun İlçe Hastanesi (Kecskemét, Macaristan), Csongrád İlçesi Sağlık Merkezidir ( Makó, Macaristan), Borsod-Abaúj-Zemplén İlçe Hastanesi ve Üniversite Eğitim Hastanesi (Miskolc, Macaristan), İkinci Tıp Bölümü, Szeged Üniversitesi (Szeged), Acil Durum Bölümü, Szeged Üniversitesi (Szeged, Macaristan), Szeged Üniversitesi Cerrahi Bölümü (Szeged, Macaristan), Gastroenteroloji Bölümü, Dr. Bugyi István Hastanesi (Szentes, Macaristan), Markusovszky Üniversitesi Eğitim Hastanesi (Szombathely, Macaristan), Bezmialem Vakıf Üniversitesi Hastanesi,

          Şuraya git: Kısaltmalar
          Erişim noktası akut pankreatit
          Nisan Akut Pankreatit Kayıt Defteri
          BMI vücut kitle indeksi
          CI %95 güven aralığı
          DM şeker hastalığı
          HL hiperlipidemi
          HPSG Macar Pankreas Çalışma Grubu
          HT hipertansiyon
          LOS hastanede kalış süresi
          MetS metabolik sendrom
          doğum günü obezite
          VEYA olasılık oranı
          SD standart sapma.
          Şuraya git: Dipnotlar


          Finansman. Çalışma, Proje Hibeleri (KH125678 ve K116634'ten PH'ye, K120335'ten TT'ye ve K128222'den LC'ye) tarafından finanse edildi; Ekonomik Kalkınma ve Yenilik Operasyonel Programı Hibesi (GINOP 2.3.2-15-2016-00048 - PH); Ulusal Araştırma, Geliştirme ve Yenilik Ofisi'nden İnsan Kaynaklarının Geliştirilmesi Operasyonel Programı Hibesi (EFOP-3.6.2-16-2017-00006; PH); ve Macaristan Bilimler Akademisi'nden Momentum Bursu (LP2014-10/2014 - PH).


          Şuraya git: Ek materyal


          Bu makalenin Ek Malzemesine şu adresten çevrimiçi olarak ulaşılabilir: https://www.frontiersin.org/articles...ntary-material EK S1


          Merkezi dağıtım.
          Ek veri dosyası için buraya tıklayın. (759K, JPEG) EK S2


          Çalışma popülasyonlarının demografisi ve temsililiği.
          Ek veri dosyası için buraya tıklayın. (1,0 milyon, JPEG) EK S3


          Veri kalitesi.
          Ek veri dosyası için buraya tıklayın. (847K, JPEG) EK S4


          Bireysel etki analizi istatistikleri.
          Ek veri dosyası için buraya tıklayın. (15K, XLSX) EK S5


          Ortak etki analizi. (A) Demografinin tanımı ve farklı sonuçların görülme sıklığı. (B) İstatistikler.
          Ek veri dosyası için buraya tıklayın. (25K, XLSX) EK S6


          Analizin veritabanı.
          Ek veri dosyası için buraya tıklayın. (227K, XLSX)
          Şuraya git: Referanslar
          • Alberti KG, Eckel RH, Grundy SM, Zimmet PZ, Cleeman JI, Donato KA, ve diğerleri. (2009). Metabolik sendromun uyumlaştırılması: uluslararası diyabet federasyonu görev gücünün epidemiyoloji ve önleme konusundaki ortak geçici beyanı; ulusal kalp, akciğer ve kan enstitüsü; Amerikan kalp derneği; dünya kalp federasyonu; uluslararası ateroskleroz topluluğu; ve obezite araştırmaları için uluslararası birlik. Dolaşım 120 1640–1645. 10.1161/CIRCULATIONAHA.109.192644 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Amerikan Diyabet Derneği (2010). Diyabet tanısı ve sınıflandırılması. Diyabet Bakımı 33 ( Ek. 1 ), S62–S69. 10.2337/dc10-S062 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Banks PA, Bollen TL, Dervenis C., Gooszen HG, Johnson CD, Sarr MG, ve diğerleri. (2013). Akut pankreatitin sınıflandırılması-2012: Atlanta sınıflandırmasının ve tanımlarının uluslararası fikir birliğine göre revizyonu. Bağırsak 62 102–111. 10.1136/gutjnl-2012-302779 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Bonfrate L., Wang DQ, Garruti G., Portincasa P. (2014). Obezite ve safra taşı hastalığı ve pankreatit riski ve prognozu. En İyi Uygulama. Res. Klin. Gastroenterol. 28 623–635. 10.1016/j.bpg.2014.07.013 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Czako L., Hegyi P., Rakonczay Z., Jr., Wittmann T., Otsuki M. (2009). Endokrin ve ekzokrin pankreas arasındaki etkileşimler ve bunların klinik önemi. Pankreatoloji 9 351–359. 10.1159/000181169 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Das SL, Singh PP, Phillips AR, Murphy R., Windsor JA, Petrov MS (2014). Akut pankreatit sonrası yeni teşhis edilen diyabet: sistematik bir inceleme ve meta-analiz. Bağırsak 63 818–831. 10.1136/gutjnl-2013-305062 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Dobszai D., Matrai P., Gyongyi Z., Csupor D., Bajor J., Eross B., ve diğerleri. (2019). Vücut kitle indeksi, akut pankreatitte şiddet ve mortalite ile ilişkilidir: bir meta-analiz. Dünya J. Gastroenterol. 25 729–743. 10.3748/wjg.v25.i6.729 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          • Dubravcsik Z., Madacsy L., Gyokeres T., Vincze A., Szepes Z., Hegyi P., ve diğerleri. (2015). Akut biliyer pankreatitin tedavisinde önleyici pankreatik stentler (PREPAST çalışması): çok merkezli, prospektif, randomize, girişimsel, kontrollü bir çalışma için ön çalışma protokolü. Pankreatoloji 15 115–123. 10.1016/j.pan.2015.02.007 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Egi M., Bellomo R., Stachowski E., French CJ, Hart GK, Hegarty C., ve diğerleri. (2008). Kan şekeri konsantrasyonu ve kritik hastalığın sonucu: diyabetin etkisi. Kritik. Bakım Med. 36 2249–2255. 10.1097/CCM.0b013e318181039a [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Forsmark CE, Vege SS, Wilcox CM (2016). Akut pankreatit. N. İngilizce J. Med. 375 1972–1981. 10.1056/NEJMra1505202 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Garg SK, Sarvepalli S., Campbell JP, Obaitan I., Singh D., Bazerbachi F., ve diğerleri. (2019). Akut pankreatit için yetişkin acil ziyaretlerinin görülme sıklığı, başvuru oranları ve belirleyicileri ve ekonomik yükü: ulusal acil servis örneğinden veriler, 2006 - 2012. J Clin Gastroenterol 53 220–225. 10.1097/MCG.00000000000001030 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Goodger RL, Asrani VM, Windsor JA, Petrov MS (2016). Metabolik komorbiditelerin akut pankreatitli hastaların sonuçları üzerindeki etkisi: kapsamlı bir inceleme. Panminerva Med. 58 86–93. [ PubMed ] [ Google Akademik ]
          • Graham BB, Keniston A., Gajic O., Trillo Alvarez CA, Medvedev S., Douglas IS (2010). Diabetes Mellitus kritik bir hastalığın sonuçlarını olumsuz etkilemez. Kritik. Bakım Med. 38 16–24. 10.1097/CCM.0b013e3181b9eaa5 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Hegyi P., Takacs T., Jarmay K., Nagy I., Czako L., Lonovics J. (1997). Sıçanlarda L-arginin kaynaklı pankreatitin ardından pankreasın spontan ve kolesistokinin-oktapeptit destekli rejenerasyonu. Uluslararası J. Pankreatol. 22 193–200. 10.1007/BF02788384 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Hritz I., Hegyi P. (2015). Akut pankreatitte basit ve doğru hızlandırılmış risk sınıflandırması için erken ulaşılabilir şiddet (EASY) indeksi. J. Gastrointestin. Karaciğer Dis. 24 177–182. 10.15403/jgld.2014.1121.242.easy [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Isomaa B., Almgren P., Tuomi T., Forsen B., Lahti K., Nissen M., ve diğerleri. (2001). Metabolik sendromla ilişkili kardiyovasküler morbidite ve mortalite. Diyabet Bakımı 24 683–689. [ PubMed ] [ Google Akademik ]
          • Jensen MD, Ryan DH, Apovian CM, Ard JD, Comuzzie AG, Donato KA, ve diğerleri. (2014). Yetişkinlerde aşırı kilo ve obezitenin yönetimi için 2013 AHA/ACC/TOS kılavuzu: Amerikan Kardiyoloji Koleji/Amerikan Kalp Derneği Uygulama Kılavuzları ve Obezite Derneği Çalışma Grubu'nun bir raporu. J. Am. Col. Cardiol. 63 (25 Nokta B), 2985–3023. 10.1016/j.jacc.2013.11.004 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Kiss L., Fur G., Matrai P., Hegyi P., Ivany E., Cazacu IM, ve diğerleri. (2018). Serum trigliserit konsantrasyonunun akut pankreatit sonucuna etkisi: sistematik inceleme ve meta-analiz. Bilim. Temsilci 8 : 14096 . 10.1038/s41598-018-32337-x [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Majumder S., Philip NA, Takahashi N., Levy MJ, Singh VP, Chari ST (2017). Yağlı pankreas: endişelenmeli miyiz? Pankreas 46 1251–1258. 10.1097/MPA.00000000000000941 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Marta K., Szabo AN, Pecsi D., Varju P., Bajor J., Godi S., ve diğerleri. (2017). Akut pankreatitin erken evresinde yüksek ve düşük enerji uygulaması (GOULASH çalışması): çok merkezli, randomize, çift kör bir klinik çalışmanın protokolü. BMJ Açık 7 : e015874 . 10.1136/bmjopen-2017-015874 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Matsuda A., Makino N., Tozawa T., Shirahata N., Honda T., Ikeda Y., ve diğerleri. (2014). Kronik yüksek yağlı diyetle beslenen Zucker diyabetik yağlı sıçanında pankreasta yağ birikmesi, fibroz ve asiner hücre hasarı. Pankreas 43 735–743. 10.1097/MPA.00000000000000129 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Miko A., Farkas N., Garami A., Szabo I., Vincze A., Veres G., ve diğerleri. (2018). Önceden var olan diyabet, akut pankreatitte lokal ve sistemik komplikasyon riskini artırır: sistematik inceleme ve meta-analiz. Pankreas 47 917–923. 10.1097/MPA.00000000000001122 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Mikolasevic I., Milic S., Orlic L., Poropat G., Jakopcic I., Franjic N., ve diğerleri. (2016). Metabolik sendrom ve akut pankreatit. Avro. J. Stajyer. Med. 32 79–83. 10.1016/j.ejim.2016.04.004 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Moran RA, Garcia-Rayado G., de la Iglesia-Garcia D., Martinez-Moneo E., Fort-Martorell E., Lauret-Brana E., ve diğerleri. (2018). Ülke çapında prospektif, çok merkezli bir çalışma olan yaş, vücut kitle indeksi ve komorbiditenin akut pankreatitte önemli sonuçlara etkisi. Birleşik Avrupa Gastroenterol. J.6 1508–1518 . 10.1177/2050640618798155 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          • Mounzer R., Langmead CJ, Wu BU, Evans AC, Bishehsari F., Muddana V., ve diğerleri. (2012). Akut pankreatitli hastalarda kalıcı organ yetmezliğini öngörmek için mevcut klinik skorlama sistemlerinin karşılaştırılması. Gastroenteroloji 142 1476–1482. 10.1053/j.gastro.2012.03.005 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Navina S., Acharya C., DeLany JP, Orlichenko LS, Baty CJ, Shiva SS, ve diğerleri. (2011). Lipotoksisite çoklu sistem organ yetmezliğine neden olur ve obezitede akut pankreatiti şiddetlendirir. Bilim. Çeviri Med. 3 : 107ra110 . 10.1126/scitranslmed.3002573 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Parniczky A., Mosztbacher D., Zsoldos F., Toth A., Lasztity N., Hegyi P., ve diğerleri. (2016). Pediatrik pankreatit analizi (APPLE Denemesi): çok uluslu ileriye dönük bir klinik araştırmanın ön çalışma protokolü. Sindirim 93 105–110. 10.1159/000441353 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Pedersen SB, Langsted A., Nordestgaard BG (2016). Aç kalmayan hafif-orta şiddette hipertrigliseridemi ve akut pankreatit riski. JAMA Stajyer Med 176 1834–1842. 10.1001/jamainternmed.2016.6875 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Premkumar R., Phillips AR, Petrov MS, Windsor JA (2015). Akut pankreatitte obezitenin klinik önemi: hedeflenen sistematik incelemeler. Pankreatoloji 15 25–33. 10.1016/j.pan.2014.10.007 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Sawalhi S., Al-Maramhy H., Abdelrahman AI, Allah SE, Al-Jubori S. (2014). Obezite ve/veya metabolik sendromun varlığı akut pankreatitin seyrini etkiler mi: ileriye dönük bir çalışma. Pankreas 43 565–570. 10.1097/MPA.00000000000000028 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Seravalle G., Mancia G., Grassi G. (2014). Hipertansiyon ve hipertansiyona bağlı kardiyovasküler hastalıklarda sempatik sinir sisteminin rolü. Yüksek Kan Basıncı. Kardiyovasküler. Önceki 21 89–105. 10.1007/s40292-014-0056-1 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Smeets X., Knoester I., Grooteman KV, Singh VK, Banks PA, Papachristou GI, ve diğerleri. (2019). Akut pankreatitte obezite ve sonuçlar arasındaki ilişki: bireysel hasta verileri meta-analizi. Avro. J. Gastroenterol. Hepatol. 31 316–322. 10.1097/MEG.00000000000001300 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Smits MM, van Geenen EJ (2011). Pankreas steatozunun klinik önemi. Nat. Rev. Gastroenterol. Hepatol. 8 169–177. 10.1038/nrgastro.2011.4 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Szakacs Z., Gede N., Pecsi D., Izbeki F., Papp M., Kovacs G., ve diğerleri. (2018). Akut pankreatit II'de yaşlanma ve komorbiditeler: ileriye dönük olarak toplanan 1203 vakanın kohort analizi. Ön. Fizyol. 9 : 1776 . 10.3389/fphys.2018.01776 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Takacs T., Hegyi P., Jarmay K., Czako L., Gog C., Rakonczay Z., Jr., ve diğerleri. (2001). Kolesistokinin, deneysel pankreatit indüksiyonunu takiben diyabetik sıçanlarda pankreas rejenerasyonunu desteklemede başarısız olur. Farmakol. Res. 44 363–372. 10.1006/phrs.2001.0843 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • von Eckardstein A., Sibler RA (2011). Lipoproteinler ve kolesterolün tip 2 diyabetin patogenezine olası katkıları . Curr. Görüş. Lipidol. 22 26–32. 10.1097/MOL.0b013e3283412279 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Whitcomb BW, Pradhan EK, Pittas AG, Roghmann MC, Perencevich EN (2005). Çeşitli yoğun bakım ünitesi popülasyonlarında başvuru hiperglisemisinin hastane mortalitesi üzerindeki etkisi. Kritik. Bakım Med. 33 2772–2777. [ PubMed ] [ Google Akademik ]
          • Çalışma Grubu Iap/Apa Akut Pankreatit Kılavuzları (2013). Akut pankreatitin tedavisi için IAP/APA kanıta dayalı kılavuzlar. Pankreatoloji 13 ( 4 Ek 2 ), e1–e15. 10.1016/j.pan.2013.07.063 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Yadav D., Lowenfels AB (2013). Pankreatit ve pankreas kanserinin epidemiyolojisi. Gastroenteroloji 144 1252–1261. 10.1053/j.gastro.2013.01.068 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Yang L., He Z., Tang X., Liu J. (2013). Tip 2 diyabet ve akut pankreatit riski: bir meta-analiz. Avro. J. Gastroenterol. Hepatol. 25 225–231. 10.1097/MEG.0b013e32835af154 [ PubMed ] [ CrossRef ] [ Google Akademik ]
          • Zsoldos F., Parniczky A., Mosztbacher D., Toth A., Lasztity N., Hegyi P., ve diğerleri. (2016). Pediatrik pankreatitin erken evresinde ağrı (ANAAPPLE Denemesi): çok uluslu prospektif bir klinik araştırmanın ön çalışma protokolü. Sindirim 93 121–126. 10.1159/000441352 [ PubMed ] [ CrossRef ] [ Google Akademik ]

          Yorum yap


          • #6
            Sitokrom P450 oksidoredüktaz ( Por ) fare mutantlarının kurtarılması, retinoik asit homeostazisine bağlı vaskülogenez, beyin ve uzuv desenlemesindeki fonksiyonları ortaya çıkarır

            Yazar bağlantıları yer paylaşımı panelini açarVanessa Ribes bir,Diana ME Otto b,Leslie Dickmann c,Katy Schmidt b,Brigitte Schuhbaur ve,Colin Henderson c,Rune Blomhoff d,C. Roland Wolf c,Cheryll Tickle b,Pascal Dollé ve

            Institut de Génétique et de Biologie Moléculaire et Cellulaire, UMR 7104 du CNRS, U. 596 de l'INSERM, Université Louis Pasteur, BP 10142, 67404 Illkirch Cedex, CU de Strasbourg, Fransa.
            https://doi.org/10.1016/j.ydbio.2006.10.032Haklara ve içeriğe sahip olun
            Bir Elsevier Altındakullanıcı lisansı
            açık Arşiv Soyut


            Sitokrom P450 oksidoredüktaz (POR), tüm sitokrom P450 enzimleri için elektron donörü görevi görür. Erken embriyonik (E9.5) öldürücü olan nakavt fare Por - / - mutantlarının genel olarak yüksek retinoik asit (RA) seviyelerine sahip olduğu bulunmuştur; bu, POR erken gelişim fonksiyonunun temel olarak farenin aktivitesiyle bağlantılı olduğu fikrine yol açmaktadır. CYP26 RA'yı metabolize eden enzimler (Otto ve diğerleri, Mol. Cell. Biol. 23, 6103-6116). Por mutantlarını bir RA muhabiri lacZ transgeniyle çaprazlayarak Por - / − olduğunu gösteriyoruzembriyolar, örneğin sefalik ve kaudal dokularda hem yüksek hem de ektopik RA sinyalleme aktivitesi sergiler. Azalan retinoid seviyelerinin Por - / - fenotipik kusurlarını tersine çevirebileceğini fonksiyonel olarak göstermek için iki strateji kullanıldı ; (i) Por - / - embriyoların tanımlanmış serumsuz ortamda kültürlenmesi ve (ii) RA sentezinde kusurlu bileşik mutantların üretilmesi yoluyla. retinaldehit dehidrojenaz 2 ( Raldh2 ) geninin haploins yetmezliğine . Her iki yaklaşım da Por − / − değerini açıkça iyileştirdierken fenotip, ikincisi mutantların E13.5'e kadar geri kazanılmasına izin verir. Arka beyin hücre kaderlerinin posteriyorizasyonu ve kusurlu orta ve ön beyin gelişimi ve vasküler kusurlarla birlikte anormal beyin desenlenmesi, E9.5 Por - / - embriyolarda kurtarıldı . E13.5 Por - / - ; Raldh2 +/− embriyoları, sırasıyla Cyp26a1 - / - ve Cyp26b1 - / - mutantlarınınkileri çarpıcı biçimde fenokopi eden karın/kaudal ve uzuv defektleri sergiledi . Por - / - ; Raldh2 +/−uzuv tomurcukları kesilmiş ve proksimalize edilmiş ve ön-arka desen sistemi oluşturulmamıştır. Bu nedenle POR fonksiyonu, yalnızca erken embriyonik gelişim sırasında değil, aynı zamanda beyin, karın/kaudal bölge ve uzuvların daha sonraki morfogenezi ve moleküler desenlenmesinde de RA seviyelerinin ve doku dağılımının uygun şekilde düzenlenmesi için vazgeçilmezdir.Anahtar Kelimeler

            Por
            Retinoidler
            P450 sitokromları
            CYP enzimleri
            Uzuv gelişimi
            Beyin desenlemesi
            Vaskülogenez

            giriiş
            Sitokrom P450 oksidoredüktaz (POR; daha önce CPR ve CYPOR olarak adlandırılmıştır), elektronların mikrozomal sitokrom P450 enzimlerine aktarılması için gerekli olan NADPH'ye bağımlı bir proteindir (CYP veya P450; Strobel ve diğerleri, 1995 ). Bu büyük enzim süper ailesi, çevresel kimyasallar, ilaçlar ve retinoidler gibi diyetten türetilmiş bileşiklerin yanı sıra steroidler, yağ asitleri ve prostaglandinler dahil olmak üzere birçok eksojen ve endojen bileşiğin oksidatif metabolizmasını katalize eder (Hasler, 1999 ) . Farelerde Por geninin fonksiyonel inaktivasyonu, embriyonik günde (E) 9.5'te ciddi gelişim kusurlarına ve ölüme yol açar ( Otto ve diğerleri, 2003 , Shen ve diğerleri, 2002 ). Por'un yüksek basınçlı sıvı kromatografisi (HPLC) analizi- / - embriyolar önemli ölçüde yüksek bir retinoik asit/retinol oranı gösterdi; bu, barajların A vitamini eksikliği olan (VAD) bir diyetle beslenmesiyle kısmen kurtarılabilecekti ( Otto ve diğerleri, 2003 ). Por - / - embriyolarda yaygın kusurlar gözlenir , ancak bu kusurların yalnızca anormal retinoid sinyallemesinin bir sonucu olup olmadığı veya diğer sitokrom P450 aracılı metabolik yolların dahil olup olmadığı henüz belirlenmemiştir.

            A vitamininin aktif bir metaboliti olan retinoik asit (RA), omurgalı embriyonik gelişimi sırasında önemli bir sinyal molekülüdür ve model oluşumu, organogenez, hücre çoğalması, farklılaşma ve apoptozda önemli bir rol oynar (Blomhoff, 1994, Chambon , 1996 , Niederreither ve Dollé, baskıda , Ross ve diğerleri, 2000 , Sporn ve Roberts, 1994 ). CYP26 alt ailesinin bilinen üç üyesinin RA üzerinde etki gösterdiği ve onu daha fazla metabolizmaya ve inaktivasyona eğilimli daha polar bileşiklere oksitlediği gösterilmiştir ( Fujii ve diğerleri, 1997 , MacLean ve diğerleri, 2001 , Tahayato ve diğerleri, 2003 , White ve diğerleri, 1997). Embriyonik gelişim sırasında CYP26 P450'ler tarafından RA metabolizmasının önemi, Cyp26a1 ve Cyp26b1 boş fare modelleri ile gösterilmiştir . Hem Cyp26a1 − / − hem de Cyp26b1 − / − genotipleri öldürücüdür. Cyp26a1 - / - embriyolar gebeliğin orta-geç döneminde ölür ve spina bifida ile kaudal kesilme de dahil olmak üzere birçok organ defektine sahiptir ( MacLean ve diğerleri, 2001 , Sakai ve diğerleri, 2001 ), Cyp26b1 - / - yavruları doğumdan hemen sonra ölürler solunum bozukluklarına ( Yashiro ve diğerleri, 2004)). Cyp26b1 - / - mutantları ayrıca ciddi uzuv kusurlarına sahiptir ( Yashiro ve diğerleri, 2004 ). Hem Cyp26a1 - / - hem de Cyp26b1 - / - farelerde, bu genlerin normal olarak eksprese edildiği alanlarda RA sinyallemesinin arttığı gösterilmiştir , bu da karşılık gelen enzimlerin RA bozulmasına katkıda bulunduğunu düşündürmektedir ( MacLean ve diğerleri, 2001 , Sakai ve diğerleri). ., 2001 , Yashiro ve diğerleri, 2004 ). Bu noktayı daha da kanıtlamak için Niederreither ve ark. (2002a) Cyp26a1 − / − olduğunu gösterdiFenotip, RA seviyelerini azaltan koşullarla genetik olarak kurtarılabilir. Erken embriyogenez sırasında ana RA sentezleyici enzimi kodlayan retinaldehit dehidrojenaz 2 ( Raldh2 ) geninin haploins yetmezliğinin tanıtılması ( Niederreither ve diğerleri, 1999 ), Cyp26a1 - / - mutantlarda ölümcül fenotipi ve arka yapıların gelişimini kurtardı ( Niederreither ) ve diğerleri, 2002a ).

            Por - / - mutantlar, Cyp26a1 - / - veya Cyp26b1 - / - boş farelere göre daha ciddi şekilde etkilenir ( Otto ve diğerleri, 2003 ) ve gelişim sırasında çok daha erken ölürler . POR eksikliğinin üç CYP26 enziminin tamamının aktivitesini bozacağı ve bu enzimlerin erken embriyoda kısmen gereksiz rollere sahip olabileceği göz önüne alındığında bu şaşırtıcı olmayabilir (H. Hamada, kişisel görüşme). POR aktivitesi tüm P450'lerin fonksiyonu için gereklidir ve ek bir olasılık da diğer CYP alt ailelerinin embriyonik gelişimde önemli roller oynaması ve POR eksikliğinin onların aktivitelerini de olumsuz etkilemesidir. Aslında, dahil olmak üzere birçok P450Cyp1a1 , Cyp2r1 ve Cyp2s1'in erken fare embriyogenezi sırasında eksprese edildiği rapor edilmiştir ( Choudhary ve diğerleri, 2003 , Choudhary ve diğerleri, 2005 ), ancak doku dağılımları veya olası işlevleri hakkında mevcut veri yoktur. Ancak Cyp1a1 nakavt fare mutantları yaşayabilir ve herhangi bir belirgin kusura sahip değildir ( Ghanayem ve diğerleri, 2000 ).

            Bu çalışmada Por - / - embriyonik fenotip ile anormal RA sinyallemesi arasındaki bağlantıyı ayrıntılı olarak incelemek için çeşitli yaklaşımlar kullandık . RA sinyalini hücresel düzeyde analiz etmek için Por mutantlarını, RA'ya duyarlı ( RARE-hsp68-lacZ ) raportör genini barındıran transgenik farelerle çaprazladık ( Rossant ve diğerleri, 1991 ). RA raportör aktivitesinin hem normal transgen ekspresyonunun olduğu bölgelerde anormal derecede yüksek olduğunu hem de Por - / - embriyoların sefalik ve kaudal bölgelerinde ektopik olarak yayıldığını gösterdik . Ayrıca Por - / -'deki retinoid seviyelerini deneysel olarak düşürmek için iki strateji kullandık.mutantlar, ya bütün embriyoların serumsuz tanımlanmış ortamda kültürlenmesi yoluyla, ya da genetik olarak Raldh2 geninin haploins yetmezliği ile. Her iki yaklaşım da Por - / - mutantlarının kurtarılmasına yol açtı ; ikinci strateji, mutantların daha ileri fenotipik analizler için E13.5'e kadar geri kazanılmasına izin verdi. Böylece Por - / - fetüslerin, Cyp26a1 - / - farelerinkine çarpıcı biçimde benzer bir karın/kaudal kesik fenotipinin yanı sıra, moleküler analizi anormal uzuv fenotipiyle tutarlı olarak hücre kaderlerinin 'yakınlaştırılmasını' ortaya çıkaran uzuv kusurlarına sahip olduğunu bulduk. Cyp26b1 - / − _mutantlar. Kurtarılmamış ve kurtarılmış Por - / - embriyoların analizi , aşırı RA uygulamasının vahşi tip embriyolara bilinen etkileriyle tutarlı olarak çeşitli beyin bölgelerinde anormal moleküler desenlemeyi ortaya çıkardı ( Avantaggiato ve diğerleri, 1996 , Simeone ve diğerleri, 1995 ve buradaki referanslar) . Toplamda verilerimiz, POR'un önemli bir gelişimsel fonksiyonunun, hem erken embriyogenezde hem de P450 metabolize edici enzimlerin aktivitesi yoluyla RA'nın uygun homeostazisine izin vermek olduğunu gösterme konusunda hemfikirdir.

            Malzemeler ve yöntemler
            Fareler ve embriyo kültürü
            Por ( Otto ve diğerleri, 2003 ) ve Raldh2 ( Niederreither ve diğerleri, 1999 ) genlerinin hedeflenen bozulmasına sahip farelerin üretilmesi tarif edilmiştir. Embriyo kültürü için hamile dişiler E9.5'te kurban edildi ve embriyolar DMEM'de (Invitrogen) rahimden çıkarıldı. Sağlam yumurta sarısı keselerine sahip embriyolar toplandı ve 50 ml'lik vidalı kapaklı tüplerdeki (5 ml ortam/embriyo; 1-2 embriyo/tüp) ısıtılmış (37°C) kültür ortamına daldırıldı. Kültür ortamı, Nakavt DMEM, %10 KSR (Nakavt Serum Değişimi), 1x N2 takviyesi artı penisilin ve streptomisin (hepsi Invitrogen'den) ve %2 hücre kültürü dereceli albüminden (Sigma) oluşuyordu (Moore-Scott ve diğerleri , 2003 ). Tüpler %40 O2 , %5 CO ile gazlandı.2 ve %55 N2 ile kaplandı ve 37°C'de bir döner tüplü fare inkübatörüne yerleştirildi ( Tanaka ve diğerleri, 2000 ). 24 saat sonra kültürlenen embriyolar, DMEM'de yumurta sarısı kesesinden disseke edildi ve %4 paraformaldehit içerisinde sabitlendi.

            Retinoik asit analizi ve taramalı elektron mikroskobu
            RA analizi, otomatik çevrimiçi katı faz ekstraksiyonu, yüksek basınçlı sıvı kromatografisi-elektrokimyasal tespit ( Otto ve diğerleri, 2003 ) kullanılarak dondurulmuş embriyolar ve ortam üzerinde gerçekleştirildi ve tek dalga UV tespiti kullanılarak doğrulandı.

            Taramalı elektron mikroskobu için embriyolar Peter fiksatifinde (%1,25 glutaraldehit, 0,1 M kakodilat tamponunda %1 paraformaldehit, pH 7,2) 4°C'de sabitlendi. Embriyolar, kakodilat tamponu içerisinde %1 osmiyum içerisinde sonradan sabitlendi, dereceli etanol içerisinde dehidre edildi, asetona yerleştirildi, kritik noktada kurutuldu ve altın/paladyum ile püskürtülerek kaplandı. Örnekler Philips XL30 emisyon taramalı elektron mikroskobunda görüntülendi.

            Yerinde hibridizasyon, X-gal analizleri ve immünohistokimya
            Tam monte embriyolar veya kriyoseksiyonlar (10 um) üzerinde digoksigenin etiketli riboproblarla yerinde hibridizasyonlar (ISH), tarif edildiği gibi gerçekleştirildi ( Chotteau-Lelièvre ve diğerleri, 2006 ). Bazı durumlarda Intavis InSituPro robotu kullanıldı; Ayrıntılar şu adrestedir : http://www.eumorphia.org/EMPReSS/ser...PReSS.Frameset (gen ifadesi bölümü). IMAGE Consortium klonu 1179112 ( Lennon ve diğerleri, 1996 ), bir Por riboprob üretmek için kullanıldı ; diğer şablon plazmidler kurum içinde üretildi veya Drs D. Duboule ( Hoxd genleri), R. Hill ( Msx1 ), CC Hui ( Gli1 ), V. Papaioannou ( Tbx5 ), A. McMahon ( Shh , En2 ) tarafından sağlandı.), G. Martin ( Fgf4 , Fgf8 , Fgf10 ), E. Olson ( dHand ), M. Petkovich ( Cyp26a1 , b1 ) ve C. Bradfield ( Arnt , Hif-1α ). RARE-hsp68-lacZ raportör transgenini taşıyan embriyoların tam montajlı X-gal analizleri tarif edildiği gibi gerçekleştirildi ( Rossant ve diğerleri, 1991 ). Bazı etiketli embriyolar %1 agaroz içerisine gömüldü ve bir vibratom (35 μm) ile bölümlere ayrıldı. Sıçan monoklonal anti-PECAM-1, anti-Flk1 ve anti-eritropoetin antikorları (Pharmingen) kullanılarak immün etiketleme, tarif edildiği gibi gerçekleştirildi ( Otto ve diğerleri, 2003).). Geleneksel histoloji, hematoksilen-eozin boyama ve TUNEL analizlerine yönelik prosedürler için bkz. http://www.eumorphia.org/EMPReSS/ser...PReSS.Frameset (Patoloji, Histoloji bölümü). Deney sayıları metin boyunca belirtilmiştir; atlanırsa, verilen her gözlem en az 3 bağımsız mutant üzerinde yapıldı.

            RNA izolasyonu ve ters transkripsiyon PCR
            Embriyolar, vahşi tip C57BL/6 farelerin veya Por +/ - mutantların ( Otto ve diğerleri, 2003 ) zamanlı çiftleşmelerinden toplandı , Trizol (Invitrogen) içine yerleştirildi ve dokuyu bozmak için vortekslendi veya homojenleştirildi (E9.5). Üreticinin talimatları izlenerek toplam RNA ekstre edildi ve 2100 Bioanalyzer (Agilent Technologies) kullanılarak ölçüldü. RNA numuneleri 15 ng/μl'ye seyreltildi ve DNaz I (Promega) ile işlendi. Birinci iplikçik cDNA sentezi, 40 ul'lik bir nihai hacimde M-MulV ters transkriptaz (Promega) ile 0,2 μg toplam RNA ve 0,5 μg poli-T oligonükleotit (15mer) kullanılarak gerçekleştirildi. Por'un 5-10 eksonlarının amplifikasyonugen yukarıdan 4 ul cDNA ve aşağıdaki primerlerin her biri 10 pmol kullanılarak gerçekleştirildi: PuReTaq Ready-to-Go PCR boncukları (Amersham Biosciences) ile ileri 5′-gccgacctgagcagcctgcct-3′ ve ters 5′-catcgagattgtttagagac-3′. PCR koşulları şu şekildeydi: 5 dakika boyunca 94°C, 30 saniye boyunca 94°C'lik 32 döngü, 20 saniye boyunca 55°C, 45 saniye boyunca 72°C. GAPDH aynı koşullar kullanılarak ancak aşağıdaki primerlerle güçlendirildi: ileri 5'-gtcgtggatctgacgtgcc-3' ve ters 5'-tgcctgcttcaccaccttct-3'. Ürünler %1 agaroz jel üzerinde görselleştirildi.

            Sonuçlar
            Por - / - embriyolarda retinoik asit sinyallemesinin uzay-zamansal modelleri
            Por - / - embriyolardaki kusurların, retinoik asit sinyallemesindeki uzaysal değişikliklerle ilişkili olup olmadığı sorusunu ele almak için, ilk olarak POR fonksiyonu eksikliğinin, gelişimin farklı aşamalarında doku dağılımını ve RA düzeylerini nasıl değiştirdiğini araştırdık . Bunu yapmak için, vahşi doğada hsp68 minimal promoterine bağlı RAR β2 RA'ya yanıt veren elemanın tetramerik bir tekrarını barındıran RA'ya duyarlı RARE-lacZ raportör transgeninin aktivitesini inceledik ( Rossant ve diğerleri, 1991 ). tip (WT) ve Por – / – embriyolar. Karşılaştırma için Por'un mekansal desenini izledik.E7.5 ve E9.5 arasındaki transkriptler. Por transkriptleri, E7.5'te RT-PCR ile düşük seviyelerde tespit edildi ve E8.5-E9.5'te önemli ölçüde arttı ( Şekil 1A ) . E8.5 embriyolarının yerinde hibridizasyonu, her yerde bulunan düşük seviyeli ekspresyonu ortaya çıkardı ( Şekil 1 B; kontrol sens riboprobuyla karşılaştırın, ek). Por transkriptleri E9.5 ve E10.5'te geniş çapta ifade edilmeye devam etti, görünüşe göre uzuv bölgelerinde daha yüksek seviyelerdeydi ( Şekil 1 C ve veriler gösterilmemiştir).

            1. İndir : Tam boyutlu resmi indirin

            Şekil 1 . Fare embriyolarında RA aktivitesini düzenlemek için POR gereklidir. (A) E7.5, 8.5, 9.5 WT ve E9.5 Por - / - embriyolarda Por ifadesinin RT-PCR analizi . Pozitif kontrol olarak tam uzunlukta Por cDNA kullanıldı (sol şerit). (B, C) E8.0 (B) ve E10.5 (C) yabani tip embriyolarda Por ifadesinin tam montajlı yerinde hibridizasyon analizi . Embriyo, ek olarak gösterilen Por sense riboprobe (negatif kontrol) ile hibridize edilmiştir. (D–I) WT'de ardışık gelişim aşamalarında (D, E: E7.75; F, G: 6–8 grup aşamaları; H, I: E9.5) RARE-lacZ raportör transgen aktivitesinin X-gal analizi ve Por - /- Embriyolar (yukarıda belirtildiği gibi). F ve G panellerindeki paneller (a-c), ardışık kranio-kaudal seviyelerde (siyah çizgilerle gösterildiği gibi) enine kesitleri gösterir. I'deki ek kalp (ht) bölgesinin yüksek oranda büyütülmüş halini göstermektedir. D, E panellerindeki parantezler kafa kıvrımlarını gösterir ve ok uçları olası gövde mezodermine işaret eder.
            RARE-lacZ raportör transgeninin ektopik aktivasyonu Por - / - mutantlarda E7.5 kadar erken bir zamanda gözlendi ( Şekil 1 D, E; n = 4). WT embriyolarında, çoğu kafa dokusu RARE-lacZ aktivitesinden yoksunken, Por - / - embriyolarda, kafa kıvrımlarının hem nöroepiteli hem de mezenkimi boyunca dereceli β-galaktosidaz aktivitesi görüldü ( Şekil 1 D, E, parantez). Daha arka seviyelerde, raportör transgenin WT embriyolarında eksprese edildiği bölgelerde Por - / - mutantlarda aktivite daha yüksekti ( Şekil 1).D, E, ok uçları). 6-8 grup aşamasındaki WT embriyolarında, baş (ön beyin, orta beyin ve ön arka beyin dahil), kaudal bölge ve kalbin çoğu , RARE-lacZ transgen aktivitesinden yoksundu ( Şekil 1 F). Por - / - embriyolarda hem baş hem de kaudal bölgeler ektopik transgen aktivitesi sergiledi ( Şekil 1 G; n = 2). E9.5'te, ölümlerinden kısa bir süre önce Por - / - embriyolar, dorsal orta ve ön beyin hariç neredeyse her yerde RARE-lacZ aktivitesi sergiledi ( Şekil 1).I, braket) ve transgen aktivitesinin genel seviyeleri kontrol embriyolarından daha yüksekti ( Şekil 1H ve I'i karşılaştırın; n = 3). Toplamda bu veriler, Por fonksiyonunun yokluğunda, baş, kaudal bölge ve kalp gibi dokularda ektopik RA aktivitesinin bulunduğunu, ancak normalde mevcut olduğu dokularda da RA sinyalinin arttığını göstermektedir.

            Raldh2 haploins yetmezliği Por – / – embriyoları kurtarıyor
            Artan retinoik asit sinyalleme seviyelerinin Por - / - erken embriyonik kusurlardan sorumlu olup olmadığını doğrudan test etmek için Por bileşiğini ürettik ; Raldh2 mutantları. Retinaldehit dehidrojenaz 2 (RALDH2), erken embriyogenez sırasında etki gösteren ana RA sentezleyici enzimdir ve Raldh2 geninin heterozigot bozulmasının, RA sinyalleme seviyelerinin azalmasına neden olduğu gösterilmiştir ( Niederreither ve diğerleri, 1999 , Niederreither ve diğerleri, 2002b). ). Bu nedenle Raldh2 haploins yetmezliğinin Por - / - fenotipini kurtarması beklenebilir .

            Bileşik heterozigot ( Por + / ; Raldh2 +/ − ) mutantlar sağlıklı ve verimliydi. Bu mutantlar yetiştirildi ve E8.5 ile E14.5 arasındaki çeşitli gelişim aşamalarında yavrular toplandı. Tüm Por − / − ; E9.5 ve E10.5'te elde edilen Raldh2 +/ − mutantları, Por - / - yavru arkadaşlarından daha iyi gelişmiştir ( Şekil 2 A–D ; aşağıya bakın). Ayrıca, E11.5–E13.5'te hiçbir Por − / − embriyosu geri kazanılmamışken, Por − / −; Raldh2 +/ − mutantları, E11.75'te beklenen frekansın %73'ünde elde edildi ( n = 32; 44 beklenen; aşağıya bakın). E13.5'e göre Por − / − frekansı ; Raldh2 +/ − mutantları %27'ye düştü ( n = 15, bunlardan 8'i rahimde ölmüştü ve daha fazla analiz edilmedi) ve yaşayabilir Por - / − yok ; Raldh2 +/ − mutantları E14.5'te elde edildi (23 beklenen). Çift boş ( Por − / − ; Raldh2 − / −) mutantlar E8.5'in ötesinde geri kazanılmadı ve bu aşamada ciddi şekilde kesildiler (yani bir baş veya kaudal gövde bölgesi tanımlanamadı) veya emildiler (veriler gösterilmemiştir). Por +/ − ; Raldh2 - / - embriyolar E10.5 civarında öldü ve fenotipik olarak Raldh2 - / - mutantlarına benzerdi (veriler gösterilmemiştir).

            1. İndir : Tam boyutlu resmi indirin

            Şekil 2 . Raldh2 haploins yetmezliği Por – / – embriyoları kurtarır . (A–D) E9.5 WT (A), Por − / − ( B) ve Por − / −'nin dış morfolojisi ; Raldh2 +/− (C, D) embriyolar. Yıldız işaretleri ve ok uçları sırasıyla eksensefali ve spina bifidayı gösterir. Dal ve ön ayak tomurcuk bölgelerinin ayrıntıları gösterilmiştir (sırasıyla üst ve alt ekler). (E – G) E7.75 kontrolünde RA raportörü RARE-lacZ transgen aktivitesinin X-gal analizleri, Por - / - ve Por - / −; Sırasıyla Raldh2 +/− embriyolar. (H – R) E9.5 kontrolünde ve Por - / − RA raportörü RARE-lacZ transgen aktivitesinin X-gal analizi ; Raldh2 +/− embriyolar (yukarıda belirtildiği gibi genotipler). K-M ve N-P panelleri sırasıyla kaudal bölgenin ve ön ayak tomurcuğunun ayrıntılarıdır. Q ve R panelleri kafanın enine vibratom bölümleridir. b1,b2, dal kemerleri; flb, ön ayak tomurcuğu; di, diensefalon; ht, kalp; ben, mezenkim; ot, otokist; ov, optik kesecik; se, yüzey ektodermi; yani somitler; televizyon, telensefalik kesecikler.
            E9.5 Por − / − arasında ayrıntılı bir karşılaştırma ; Raldh2 +/ − mutant embriyolar ( n = 56) ve Por - / - tek mutantlar ( n = 21) , fenotipik değişkenlik olmasına rağmen mutant fenotipinin birçok yönünün Raldh2 haploins yetmezliği tarafından kurtarıldığını gösterdi. E9.5'te tüm Por − / − ; Raldh2 +/ − mutantları eksenel dönüşlerini tamamlamıştı ve Por − / − ile karşılaştırıldığındatek mutantlar, daha büyük somitlerle birlikte daha geniş bir ön-arka eksene ve daha iyi gelişmiş bir kafaya sahipti ( Şekil 2 B-D). Ancak bileşik mutantların çoğunda ( n = 54/56), orta beyin açık kaldı (yıldız işaretleri), kalp tamamen dönmedi ve kaudal bölge kesildi. Ayrıca spina bifida (ok başı) ve eksensefali de sergilediler ( Şekil 2 C, D). Şiddetli vakaların çoğunda (bileşik mutantların %35'i; n = 20/56), baş açıkça kesilmiştir (yıldız işareti), dal kemerleri yoktur, kalp anormaldir ve ön ayak tomurcukları çok küçüktür ( Şekil 2 D). Geriye kalan %65 Por − / − ; Raldh2 +/- Mutantların boyutu neredeyse normaldi, ancak dal kemerlerinin ve uzuv tomurcuklarının şekli ve boyutu WT yavrularından biraz daha küçüktü ( Şekil 2 A ve C'yi karşılaştırın).

            E9.5 Por – / −'de kalan fenotipik kusurların olup olmadığını araştırmak için ; Raldh2 +/ − embriyolar, anormal derecede yüksek endojen RA seviyelerinin kalıcılığı ile ilişkilidir; RARE - lacZ transgenini barındıran mutantlar ürettik. E7.5'te analiz edildiğinde Por − / − ; _ _ Raldh2 +/ - mutantları ( Şekil 2 F; n = 2), WT ve Por - / -'de görülenler arasında orta düzeydeydi embriyolar ( Şekil 2 E ve G, sırasıyla). E9.5'te tüm Por − / − ; Raldh2 +/ − ; NADİR - lacZ embriyoları ( n = 6) ektopik lacZ aktivitesi sergiledi. Kötü kurtarılan mutantlarda ( n = 4), baş dokuları boyunca lacZ aktivitesi bulunurken ( Şekil 2 J), en iyi kurtarılan mutantlarda ( n = 2) ektopik aktivite bölgesel olarak, örneğin dal kemerlerinde ve kalpte gözlemlendi ( Şekil 2 J). .2 ben). Bölüm analizi ektopik lacZ gösterdibaşın hem yüzey ektoderminde hem de mezenşiminde aktivite ( Şekil 2 Q, R). Ön beyin nöroepitelinde ektopik ve/veya anormal derecede yüksek aktivite de görüldü ( Şekil 2 Q, R'deki telensefalik vezikülleri veya diensefalik/optik sap bölgesini, braketleri karşılaştırın). RA raportör aktivitesi, bileşik mutantların anormal kuyruk tomurcuğunun ucuna kadar tespit edildi ( Şekil 2 L, M), oysa bu aktivite normalde WT embriyolarının kuyruk tomurcuğunda mevcut değildir ( Şekil 2 K). Bu kaudal aktivite, kötü kurtarılan mutantlarda en yüksek seviyedeydi ( Şekil 2 M). Ayrıca RARE-lacZ transgeni, WT embriyolarında büyüyen ön ayak tomurcuklarının distal hücrelerinde aşağı regüle edilir ( Şekil 2).N), tüm durumlarda RA muhabiri aktivitesi Por - / -'deki tomurcukların uzak ucuna kadar görüldü ; Raldh2 +/ − embriyolar ( Şekil 2 O, P, ok uçları).

            Özetle, Por - / - fenotipinin Raldh2 haploins yetmezliği ile önemli ölçüde iyileştirilebileceğini bulduk . Bununla birlikte, bu bileşik mutantların hem baş hem de kaudal bölgelerinde ektopik RA raportör transgen aktivitesi mevcut olduğundan, kurtarma işleminin tamamlanmaması ve baş ve kuyrukta anormalliklerin hala tutarlı bir şekilde gözlemlenmesi şaşırtıcı değildir.

            Por - / - mutantlarında anormal beyin deseni
            Gelişimin başlangıcından itibaren RA sinyalini azaltan bir genetik sistemin mevcudiyeti, erken embriyolarda ortaya çıkan fenotipik kusurları keşfetme ve bu anormalliklerin, değiştirilmiş embriyonik RA sinyallemesinin bilinen etkileriyle tutarlı olup olmadığını görme fırsatı sağlar. Hem RA fazlalığı hem de eksikliği koşullarının, spesifik beyin bölgelerinin desenlenmesini etkilediği bilinmektedir ( Avantaggiato ve diğerleri, 1996 , Niederreither ve diğerleri, 2000 , Simeone ve diğerleri, 1995 ve buradaki referanslar). Por - / - embriyoların iki eşkenar dörtgen işaretleyici ( Krox20 ve Crabp1) ile ön analizi) eşkenar dörtgenin anormal şekilde genişleyebileceğini öne sürmüştü ( Otto ve diğerleri, 2003 ). Beyin modelini daha fazla analiz etmek için hem kurtarılmamış hem de genetik olarak kurtarılmış E9.5 Por - / - mutantlarında ayrıntılı bir moleküler analiz gerçekleştirdik .

            Normalde eşkenar dörtgen (r)4 ile sınırlı olan Hoxb1 ekspresyonunun analizi ( Şekil 3 A ), Por - / - mutantlarda neredeyse başın tepesine kadar uzanan bir ön genişleme gösterdi ( Şekil 3 C). Por − / −'de ektopik Hoxb1 ifadesi de görüldü ; Genişletilmiş bir eşkenar dörtgen alan alanına ve olası orta beyin seviyesine kadar eksprese eden hücre kümelerine sahip Raldh2 +/ - mutantları ( Şekil 3 B), ön arka beyin kimliklerinin genişlemesinin, RA seviyelerinin genetik olarak düşürülmesiyle yalnızca kısmen kurtarıldığını gösterir.

            1. İndir : Tam boyutlu resmi indirin

            Şekil 3 . Por - / - mutantlarda anormal beyin deseni . E9.5 Por − / − ve Hoxb1 (A–C), Fgf8 (D–F), En2 (G–I), Otx2 (J–L) ve Foxg1'in (M–O) tam montajlı yerinde hibridizasyonu Por - / - ; Raldh2 +/− embriyolar (yukarıda belirtilen genotipler). Tüm ana paneller profil görünümleridir. Ekleme panelleri, başka bir mutantın profil görünümünün gösterildiği I hariç, aynı embriyoların sırt görünümlerini gösterir. E, F panellerindeki ok ucu ve braket anormal Fgf8 gösteriyorBeyin nöroepitelindeki ekspresyon. J-L panellerindeki ok uçları, yüksek Otx2 eksprese eden (varsayımsal orta beyin) alanın ön ve arka sınırlarını gösterir. anr, ön sinir sırtı; ba, dal kemerleri; ov, optik kesecik; tv, telensefalik kesecik.
            Ekspresyonu normalde orta arka beyin isthmusuyla sınırlı olan Fgf8'i ( Martinez ve diğerleri, 1999 ) ( Şekil 3 D) ve bir bölgeyi sınırlayan Engrailed2'yi ( En2 ) analiz ederek daha ön beyin yapılarının modelini izledik. kıstağın her iki tarafı boyunca spesifik alan ( Joyner, 1996 ) ( Şekil 3G ). Fgf8 transkriptleri, Por - / - mutantlarında ( Şekil 3 F, braket) beynin geniş bir alanı üzerinde düşük seviyelerde eksprese edildi ; bu, ayrı, fonksiyonel bir orta arka beyin sinyalleme bölgesinin oluşturulamadığı anlamına geliyor. 3 bileşik mutanttan 2'sinde,Fgf8 istmik ekspresyonu anormal derecede zayıftı ( Şekil 3 E, ek), üçüncü mutant ayrıca Fgf8 transkriptlerinin rostral genişlemesini gösterdi ( Şekil 3 E, ana panel). Ayrıca hem Por - / - hem de Por - / −'nin ön nöral sırtında ve dal bölgesinde anormal derecede zayıf Fgf8 ekspresyonu (varsa) gözlemledik ; Raldh2 +/ − mutantlar ( Şekil 3 E, F). En2 transkriptleri Por - / - embriyolarda zar zor tespit edilebiliyordu ( Şekil 3I), muhtemelen orta arka beyin sınırındaki düşük Fgf8 ekspresyon seviyelerinin bir sonucu olarak ( Liu ve Joyner, 2001 ). En2, orta arka beyin sinyalleme bölgesinin kurtarılmasıyla tutarlı olarak neredeyse normal boyuttaki bir nöroepitelyal alanda bileşik mutantlarda eksprese edildi ( Şekil 3H ). Bununla birlikte, En2 pozitif alanın optik keseciklere yakın konumu, En2 eksprese etmeyen ön orta beynin boyutunun küçültülmüş olabileceğini düşündürmektedir ( Şekil 5 H). Bu , WT orta beyinde yüksek seviyelerde ve telensefalik veziküllerde daha düşük seviyelerde eksprese edilen Otx2 analiz edilerek doğrulandı ( Martinez-Barbera ve diğerleri, 2001).) ( Şekil 3 J). Por - / - embriyolarda , yüksek Otx2 ekspresyonunun olduğu bölgenin boyutu küçültülmüştü ve neredeyse optik keseciklere bitişikti ( Şekil 3 L, ok uçları). Daha rostral olarak telensefalik alan da ciddi şekilde azalmıştır. Bu kusurlar Por − / −'de kısmen kurtarıldı ; Daha büyük bir Otx2 varsayılan orta beyin bölgesi sergileyen Raldh2 +/ - mutantları ( Şekil 3 K'deki ok uçları). Telensefalonun bir belirteci olan Foxg1 ( Şekil 3 M), Por'da ifade edilmedi -/ - embriyolar ( Şekil 3 O), ayrıca ön ön beynin kusurlu gelişimini göstermektedir. Bu kısmen Raldh2 haploins yetmezliği üzerine kurtarıldı( Şekil 3 N).

            Genel olarak bu sonuçlar, Por - / - mutantlarının beynindeki anormallikleri , arka arka beyinde anormal bir genişlemeyi, orta arka beyin sinyalleme bölgesinin uygunsuz bir şekilde kurulmasını ve kesik bir orta ve ön beyini göstermektedir. Bu anormallikler, RA'ya maruz kalmanın WT fare embriyoları üzerindeki etkilerini hatırlatır ( Simeone ve diğerleri, 1995 ve buradaki referanslar).

            Por - / -' da damar gelişiminin kurtarılması ; Raldh2 +/ − embriyolar
            Por - / - embriyoların erken ölümü , vasküler sistemin kusurlu gelişimi ile ilişkilendirilmiştir ve embriyonik vasküler gelişim için hayati önem taşıyan birkaç genin ( Hif1α , Arnt , Flk1 ) mutant embriyolarda anormal derecede düşük seviyelerde eksprese edildiği bulunmuştur (1). Otto ve diğerleri, 2003 ). Damar sisteminin gelişmiş gelişiminin, genetik olarak kurtarılan mutantların uzun süreli hayatta kalma süresini açıklayıp açıklayamayacağını araştırdık. Flk1 (VEGF reseptörü 2'yi kodlayan), gelişen vasküler endotelinin bir belirteci olarak kullanıldı ( Şekil 4 A-C ). Önceki gözlemlerle tutarlı ( Otto ve diğerleri, 2003)), kurtarılmamış E9.5 Por - / - embriyolar, ana kan damarlarının gelişemediği parçalı bir endotel ağı gösterdi ( Şekil 4 C; n = 2). Buna karşılık E9.5 Por – / – ; Raldh2 +/ − embriyolar, dorsal aort ve aort ağrılarının açıkça görüldüğü daha ayrıntılı bir damar ağı gösterdi ( Şekil 4 B; n = 4). Kalp endotel ağı da Por - / -'de daha iyi gelişmiştir ; Raldh2 +/ − mutantlar ( Şekil 4 B).

            1. İndir : Tam boyutlu resmi indirin

            Şekil 4 . Por - / -' da damar gelişiminin kurtarılması ; Raldh2 +/− embriyolar. E9.5 Por - / - ve Por - / -'de Flk1 (A–C) ve PECAM-1 immün algılamanın (D–I) tam montajlı yerinde hibridizasyonu ; Raldh2 +/− embriyolar (yukarıda belirtilen genotipler). D, F, H ve E, G, I panelleri sırasıyla branş ve somitik bölgenin karşılaştırmalı görünümleridir. aa, aort kemeri; da, dorsal aort; ht, kalp.
            Vasküler kurtarma ayrıca trombosit endotelyal hücre yapışma molekülü 1 (PECAM-1) için immün boyama ile gösterilmiştir ( Şekil 4 D-I). Por - / - ' de daha büyük damarların daha küçük kılcal damarlara ayrıldığı hiyerarşik olarak organize edilmiş bir damar sistemi görülüyordu ; Raldh2 +/ − embriyolar (örneğin, somitik seviyelerde: Şekil 4 E, ok ucu; n = 3). Kontrol yavrularındaki kadar ayrıntılı olmasa da ( Şekil 4 E), bu ağ kurtarılmamış mutantlarda görülen kötü organize olmuş damar ağıyla tezat oluşturuyordu ( Şekil 4 F, ok ucu; n = 2). PECAM-1 boyaması aynı zamanda bileşik mutantlarda, dallanma arkları morfolojik olarak mevcut olmasa bile aortik arkların varlığını da gösterdi ( Şekil 4 F, ok uçları; D ve I ile karşılaştırın).

            Bu gözlemler, embriyonik RA seviyelerindeki bir azalmanın Por - / - mutantlarda vasküler ağın gelişimini iyileştirebildiğini göstermektedir . Kılcal damar ağının eksik oluşumu, muhtemelen bozulmuş kalp fonksiyonuyla birleştiğinde Por - / -'nin intrauterin ölümünü açıklayabilir ; Raldh2 +/ − mutantlar.

            Por – / – embriyoların serumsuz bir kültür sisteminde kurtarılması
            Retinoid düzeylerinin azaltılmasıyla Por - / - fenotipinin iyileştirilip iyileştirilemeyeceğini değerlendirmek için ek bir yaklaşım kullanıldı . E9.5 Por - / - embriyoların eksplante edildiği ve tanımlanmış serumsuz ortamda (yani herhangi bir retinoid kaynağından yoksun) kültürlendiği deneyler gerçekleştirdik . Daha önce endojen all -trans -RA'nın all- trans -retinol (atRA/atROH) oranının E9.5 Por - / - embriyolarda WT yavru arkadaşlarıyla karşılaştırıldığında 2 kattan fazla arttığını bildirmiştik (1,49'a karşı 0,64; Otto ) ve diğerleri, 2003). 24 saatlik serumsuz kültürden sonra tüm embriyolar üzerinde HPLC analizi yapıldı; bu, havuzlanmış WT ve Por +/− embriyolar için 0,46 ( n = 9) ve Por - / - embriyolar için 0,64 atRA/atROH oranı verdi ( n = 5). Bu değerlerdeki fark istatistiksel olarak anlamlı değildi ve dolayısıyla Por - / - mutantlarında gözlemlenen anormal RA/retinol oranının 24 saatlik kültürden sonra normale döndüğü görülüyor.

            Kültür sistemi, hem WT hem de Por - / - embriyoların ( Şekil 5 A – D ) önemli gelişimini destekledi ve 24 saat boyunca kültürlenen E9.5 Por - / - embriyoların çoğunda ( n = 41), bazı yönlerden mutant fenotip kurtarıldı ( Tablo 1 ; Şekil 5) B-D). Kültürün başlangıcında, tüm mutant embriyoların dal kemerleri ve uzuv tomurcukları yoktu, açık bir nöral tüp sergiliyordu ve ciddi kalp kusurları vardı; Bu embriyoların 14'ü dönmüş ve 12-16 somite sahipken, geri kalan 27 mutant dönmemiş ve anormal kuyruk bölgesiyle birlikte kısaltılmış bir gövdeye sahipti. Kültürleme sırasında çoğu mutant embriyoda ön beyin kesecikleri, ilkel dal kemerleri ve ön ve arka bacak tomurcukları gelişti ve bunların nöral tüpleri kısmen veya tamamen kapandı (Tablo 1 ; Şekil 5 B-D). Kültürün başlangıcında dönüşmemiş embriyolara kısmi dönüş uygulandı. Bununla birlikte, kültürün başlangıcında ciddi şekilde hatalı biçimlendirilmiş olan 8 mutant embriyo, daha sonra neredeyse hiç iyileşmedi.

            1. İndir : Tam boyutlu resmi indirin

            Şekil 5 . Tanımlanmış serumsuz kültür sisteminde Por – / – embriyoların kurtarılması . (A–D) E9.5'te toplanan ve 24 saat boyunca serumsuz ortamda kültürlenen WT (A) ve Por – / – (B–D) embriyolarının taramalı elektron mikrografları (A–C: profil görünümleri; D: sırt) tamamlanmamış nöral tüp kapanmasını gösteren görünüm). (E – L) PECAM-1'in (E – H) immün tespiti ve 24 saat boyunca kültürlenen E9.5 embriyolarında Arnt (I, J) ve Fgf8'in (K, L) tam montaj yerinde hibridizasyonu (yukarıda belirtilen genotipler) . Panel F ve panel H'deki ok uçları intersomitik damarları gösterir. L panelindeki oklar, Fgf8'in ön ayak tomurcuk bölgelerindeki noktalı ifadesini işaret eder.Por − / − embriyo. aa, aort kemeri; da, dorsal aort; fb, ön beyin; fl, ön ayak tomurcuğu; hl, arka bacak tomurcuğu; yani somitler.
            Tablo 1 . 24 saatlik kültürden sonra vahşi tip ve Por - / - mutantların fenotipik karşılaştırması
            Por +/+ / Por +/ − Evet 25–37 3–4, füzyon 4 Kapalı Evet Asimetrik, ilmekli Evet > 70
            Tornalanmış Por − / − Evet 22–28 İlkel 2–4 Genellikle kapalı Evet Asimetrik Evet 14
            Zar zor uygulanabilir Por − / − HAYIR 10–18 HAYIR 0–2 (ön ekstremite tomurcukları) Açık HAYIR Asimetrik HAYIR 8
            Çevrilmemiş Por − / − Kısmi 18–24 İlkel 0–4 Kısmen kapalı Evet Asimetrik Evet 19
            E9.5 vahşi tip ve Por - / - embriyolar, 24 saat boyunca %10 nakavt serum replasmanı içeren Nakavt DMEM'de kültürlendi. Tüm Por - / - embriyolar, atan bir kalple değerlendirilen kültür koşullarında hayatta kaldı.

            A vitamini eksikliği olan annelerden Por - / - embriyoların elde edildiği önceki deneylere benzer şekilde ( Otto ve diğerleri, 2003 ), kültürlenmiş Por - / - embriyolarda vasküler gelişimin arttığını gösteren moleküler analizler gerçekleştirdik . Kültürlenmiş Por - / - embriyolarda PECAM-1 için immün boyama , dorso-ventral olarak uzanan intersomitik damarların oluşumunu ( Şekil 5 F, H, ok uçları) ve dorsal aort ile branşiyal arasındaki iletişimi içeren vasküler kurtarmayı (Şekil 5 E-H) ortaya çıkardı . kemer arterleri ( Şekil 5 H, kültürlenmiş E9.5 WT embriyosuyla karşılaştırın,Şekil 5G ). Arnt ( Şekil 5 I, J) ve Hif1a , Epo ve Flk1 (veriler gösterilmemiştir)dahil olmak üzere, embriyonik vasküler gelişim için hayati önem taşıyan birçok gen ve proteinin ekspresyonu da kurtarılmıştırAyrıca uzuv büyümesinde önemli olan genler olan Fgf8 ve Shh'yi de analiz ettikHer iki genin transkriptleri, E9.5 Por - / - embriyoların olası uzuv tomurcuk bölgelerinde tespit edilmedi( Otto ve diğerleri, 2003 ), ancak 24 saat boyunca kültürlenen 2/2 E9.5 mutantlarında, Fgf8, ön ayakların yüzey ektoderminde eksprese edildi. noktalı desendeki bölgeler ( Şekil 5 L, K ile karşılaştırın). Oysa şşşkültürlenmiş WT embriyolarının ön ayak tomurcuklarında transkriptler mevcuttu, bunlar incelenen 3 kültürlenmiş Por - / - embriyodan yalnızca 1'inde çok düşük seviyelerde tespit edildi (veriler gösterilmemiştir).

            Özetle, embriyo kültürü deneyleri Por - / - embriyonik fenotipin anormal RA seviyelerinden kaynaklandığına dair ek bir kanıt sağlar. Ayrıca, yalnızca E9.5'ten itibaren retinoid düzeylerini deneysel olarak azaltarak bu fenotipi iyileştirmenin mümkün olduğunu da gösterdiler. Bu gözlemler, düzenlenmiş RA seviyelerinin, embriyonik damar sisteminin sürekli gelişimi, gövde ekseninin uzaması ve uzuv tomurcuklarının aşırı büyümesi için kritik olduğu fikriyle tutarlıdır.

            Por - / - ; Raldh2 +/ − fetüsler Cyp26a1/b1 − / − - benzeri fenotipik kusurlar gösterir
            Hem genetik kurtarma hem de embriyo kültür sistemi, embriyonik retinoid seviyelerindeki azalmanın Por - / - fenotipini iyileştirebileceği konusunda hemfikirdi . Embriyo kültürü, mutantların E9.5'in çok ötesinde gelişmesine izin vermedi, ancak Por - / - mutantın hayatta kalmasını birkaç gün uzatan genetik sistemin mevcudiyeti , POR fonksiyonunun daha sonraki gelişim aşamalarında ilk kez incelenmesi fırsatını sağladı. Bu nedenle Por − / −'yi analiz ettik ; E12.5 ve E13.5'te Raldh2 +/ − bileşik mutantlar ( Şekil 6 , Şekil 7 ; n = 3 ven = 10, sırasıyla). Bu mutantların tümü eksensefalikti ( Şekil 6 C, yıldız işareti) ve mikrognatili (braket) kesik bir yüze sahipti. Ayrıca kaudal kesikli spina bifida ve anormal derecede yakın veya bazen kaynaşmış arka bacaklara sahip sirenomeli benzeri bir fenotip sergilediler ( Şekil 6 C, ek).

            1. İndir : Tam boyutlu resmi indirin

            Şekil 6 . Por - / - ; Raldh2 +/− fetüsleri Cyp26a1/b1 −/ − benzeri fenotipik kusurlar gösterir . (A–D) E12.5 kontrolü ve Por - / −'nin karşılaştırmalı profil görünümleri ve ön kafa bölümleri (hematoksilen-eozin boyama) ; Raldh2 +/− embriyolar (yukarıda belirtilen genotipler). Yıldız işareti ve köşeli parantez (C) sırasıyla eksensefali ve kesik yüz bölgesine işaret eder. Ek parça, arka bacaklarda (hl) ve açık nöral tüpte (nt*) anormal orta hat konumunu göstermektedir. (E–H) E12.5 kontrol ve Por'da arka karın boşluğunun (E, G) ve lumbosakral bölgenin (F, H) karşılaştırmalı bölümleri -/ − ; Raldh2 +/− embriyolar. Ekleme panelleri (E, G), mezonefrozun bir ara kesit düzlemini gösterir. Mutantta mezonefroz ve metanefrozun orta hat füzyonuna dikkat edin. ao, aort; fl, ön ayak; gr, genital sırt; hg, arka bağırsak; ms, mezonefroz; mt, metanefroz; nt*, anormal sinir dokusu; işletim sistemi, optik sap; tv, telensefalik kesecik.

            1. İndir : Tam boyutlu resmi indirin

            Şekil 7 . Por − / − uzuv defektleri ; Raldh2 +/− mutantları. (A – C) E13.5'teki dış uzuv morfolojisi (ana paneller: ön ayaklar; ek parçalar: arka bacaklar). (D – F) E13.5 ön ayaklarının Alcian mavisi kıkırdak boyaması. (G – J) Sırasıyla E12.5 ve E13.5 ön ayaklarında Sox9 (G, H) ve p21'in (I, J) yerinde hibridizasyonunun tamamı . Yukarıda belirtilen embriyo genotipleri.
            Por − / −'nin histolojik analizi ; Raldh2 +/ − mutantları ciddi beyin kusurları ortaya çıkardı: telensefalik kesecikler hipoplastikti ( Şekil 6 B ve D'yi karşılaştırın; veriler gösterilmemiştir), üçüncü bir ventrikül eksikliği nedeniyle optik saplar anormal derecede birbirine yakındı ( Şekil 6 D) , oysa daha arkada, diensefalik nöroepitelyum açık ve düzensizdi (gösterilmemiştir). Por - / - ; Raldh2 +/ - mutantları ayrıca arka mezonefroz ve genital çıkıntıların kısmi orta hat füzyonuna sahipti ( Şekil 6 G, WT embriyolarıyla karşılaştırın, Şekil 6).E) ve at nalı böbrek, arka metanefrik tübüllerin orta hat füzyonuyla ( Şekil 6 H). Anormal kaudal bölgeleri, düzensiz sinir dokusunun ektopik parçalarını içeriyordu ( Şekil 6 H, nt*).

            Tüm Por − / − ; E13.5'te elde edilen Raldh2 +/ − mutantların ( n = 7) anormal uzuvları vardı ( Şekil 7 A–F). Bunlardan beşinde, tüm montajlı alcian mavisi boyamayla ortaya çıktığı gibi, organize iskelet deseni olmayan, ciddi şekilde kesilmiş ön ve arka bacaklar ( Şekil 7 B, WT uzuvlarla karşılaştırın, Şekil 7 A) sergilendi ( Şekil 7 D, E). Diğer ikisinin uzuvları daha iyi gelişmişti, ancak boyutları küçülmüştü ( Şekil 7 C, F). Prekartilajinöz yoğunlaşmaların erken bir belirteci olan Sox9'un analizi ( Wright ve diğerleri, 1995 ), E12.5 Por'da şunu gösterdi: − / − ; Raldh2 +/ - mutantlarında, distal (zeugopod, karpal veya rakam) yoğunlaşmalar oluşturacak şekilde düzgün bir şekilde dallanmayan merkezi bir yoğunlaşma gelişmiştir ( Şekil 7 H, WT prekartilajinöz yoğunlaşmalarla karşılaştırın: Şekil 7 G). Böylece Por - / - ; Raldh2 +/ − mutantları tutarlı uzuv anormallikleri sergiler; bu anormallikler, en şiddetli vakalarda normal proksimo-distal diziye göre iskelet öncesi yoğunlaşmaların dallanmaması ile karakterize edilir.

            Özellikle uzuv ve gövde miyojenik blastemlerinde ifade edilen bir cdk inhibitörünü kodlayan p21 geninin ifadesi ( Hawke ve diğerleri, 2003 , Zhang ve diğerleri, 1999 ), en iyi geliştirilmiş E13.5 Por - / -'de bile neredeyse tespit edilemezdi ; Raldh2 +/ - uzuvları, ekspresyonu bitişik gövde seviyelerinde görülmesine rağmen ( Şekil 7 I, J ve veriler gösterilmemiştir). Pax3'ü eksprese eden olası kas hücreleri ( Bober ve diğerleri, 1994 ), Por - / -'de daha erken bir aşamada (E10.5) tespit edildiğinden ; Raldh2 +/ −uzuv tomurcukları (veriler gösterilmemiştir), Por - / -'de kas farklılaşması gecikebilir veya durdurulabilir ; Raldh2 +/ − mutant uzuvlar.

            Toplamda Por − / −'de gözlenen anormallikler ; Raldh2 +/ − fetüsleri, daha önce Cyp26a1 − / − veya Cyp26b1 − / − null mutantlarda açıklanan fenotipik kusurları açıkça hatırlatır . Dolayısıyla, spina bifida, karın ve kaudal kusurlar, Cyp26a1 - / - mutantlarının anormal kaudal fenotipini fenokopi eder ( Abu-Abed ve diğerleri, 2001 , Sakai ve diğerleri, 2001 ), oysa yüz ve uzuv kesikleri Cyp26b1 - / − anormallikler gibi (Yashiro ve diğerleri, 2004 ; M. Petkovich, kişisel görüşme). Bu sonuçlar , bileşik mutantlarda gözlemlenengeç Por - / - fenotipinin, en azından kısmen, CYP26'nın RA metabolize edici aktivitesinin bozulmasından kaynaklandığını kuvvetle önerir.

            Kurtarılmış ve kurtarılmamış Por - / - embriyolarda uzuv gelişiminin moleküler analizi
            Por - / -'de gözlenen anormal uzuv fenotipi ; Raldh2 +/ − fetüsler, bizi büyümelerinin ve/veya desen kusurlarının altında yatan moleküler anormallikleri araştırmaya yöneltti. Ayrıca, kurtarılmamış Por - / - embriyoların moleküler analizine de yeniden başladık; önceki araştırmalar, uzuv tomurcuğu büyümesinin başlamadığı sonucuna vardı ( Otto ve diğerleri, 2003 ). Uzuv gelişimindeki bu başarısızlığın temelini araştırmak için, uzuv tomurcuğu başlangıcında yer alan genlerin ekspresyonu, kurtarılmamış mutantlarda E9.5'te incelenmiştir. Tbx5hem WT hem de Por - / - embriyoların ( Şekil 8 A, B ) yan plaka mezoderm prospektif ön ayakları bölgelerinde karşılaştırılabilir seviyelerde eksprese edildiği ve Lef1 ve Fgf10 gibi Tbx5'in aşağı akışında olduğuna inanılan genlerin transkriptlerinin karşılaştırılabilir seviyelerde eksprese edildiği bulundu. ayrıca benzer şekilde WT ve Por - / - embriyoların uzuv oluşturan bölgelerinde yoğunlaşmıştır (veriler gösterilmemiştir). Bununla birlikte, Por -/- embriyoların lateral plaka mezoderminde dHand ve Msx1'in ekspresyonu azalmıştır ( Şekil 8).C, D). Prospektif uzuv ektoderminde Fgf8 indüksiyonunun eksikliğine eklenen bu moleküler değişiklikler ( Otto ve diğerleri, 2003 ), mutantlarda uzuv tomurcuklanmasının başarısızlığını açıklayabilir.

            1. İndir : Tam boyutlu resmi indirin

            Şekil 8 . Por − / − ve Por − / −'de uzuv gelişiminin moleküler analizi ; Raldh2 +/− embriyolar. Tbx5 (A, B), Msx1 (C, D, ekler), dHand (C, D, ana paneller; E, F), Fgf8 (G, H), Mkp3 (I, J)'nin tam montajlı yerinde hibridizasyonu , E8.75–9.5 embriyolarda Shh (K, L) ve Gli1 (M, N) ve Bmp2(O, P) E11.5 embriyolarında. (A – D) Yan plaka mezoderminin ve tomurcuklanan uzuvların profil görünümleri. Diğer tüm panellerde uzuv tomurcukları sırt yönlerinden görülmektedir. K-N panellerindeki eklerde E10.5'te toplanan ek uzuv örnekleri gösterilmektedir. Kesikli çizgiler (H, ek parçalar) uzuv-gövde sınırını gösterir. Panel F'deki oklar, uzuv tomurcuk hücreleri içindeki anormal derecede düşük dHand ifadesine işaret eder.
            Genetik olarak kurtarılan mutantlarda erken uzuv gelişimi de E9.5'te izlendi. Por − / − ; _ Raldh2 +/ − embriyolarda dHand , lateral plaka mezoderminde normal seviyelerde eksprese edildi, ancak arka bacak tomurcuğu mezenkiminde anormal derecede düşük seviyelerde eksprese edildi ( Şekil 8 E, F, oklar; n = 3). Ciddi şekilde etkilenen birkaç bileşik mutantta, dHand'ın ekspresyonu uzuv tomurcukları içinde tespit edilemezdi ve yan tarafta azaldı (veriler gösterilmemiştir; n = 2).

            Analiz edilen tüm Por - / -' lerin uzuv tomurcuklarında Fgf8 ekspresyonu anormaldi ; Raldh2 +/ − mutantlar ( n = 5). Por'un yaklaşık %25'i - / - ; Raldh2 +/ - embriyolar, tespit edilebilir bir Fgf8 ekspresyonu olmayan ilkel uzuv tomurcuklarına sahipti ( Şekil 8 H, ek), diğerleri ise anormal derecede düşük seviyelerde Fgf8 eksprese eden apikal ektodermal çıkıntıya (AER) sahip iyi gelişmiş tomurcuklara sahipti ( Şekil 8'i karşılaştırın). G ve H). Mkp3FGF sinyallemesinin aşağı yönlü bir hedefi olan FGF sinyallemesi, normalde WT uzuv tomurcuklarında distalden proksimale doğru bir gradyanla ifade edilir ( Şekil 81 ; Dickinson ve diğerleri, 2002 ). İfadesi Por - / -'nin en ilkel uzuv tomurcuklarında zar zor tespit edilebiliyordu ; Raldh2 +/ - embriyolar (veriler gösterilmemiştir), nispeten iyi gelişmiş tomurcuklara sahip mutantlarda ise distal mezenşimde ifade edilmiştir ( Şekil 8 J). Sol ve sağ ön ayak tomurcukları arasında ekspresyonun eşit olmadığı, sağ taraftaki tomurcuklarda daha düşük seviyelerin olduğu dikkat çekicidir ( Şekil 8 J).

            Shh ifadesi E9.5 Por − / −'de saptanamadı ; Rudimenter uzuv tomurcuklarına sahip Raldh2 +/ - embriyolar (veriler gösterilmemiştir; n = 3), ancak daha iyi gelişmiş uzuvlara sahip bazı mutantlar, arka mezenkimde beklendiği gibi Shh'yi ifade etmiştir ( Şekil 8 K ve L'yi karşılaştırın; n = 2). Mkp3 için gözlemlendiği gibi , sol tarafta daha yüksek seviyelerle birlikte eşit olmayan sol-sağ ifadesi gözlendi (veriler gösterilmemiştir). İki Por - / - ; E10.5'te analiz edilen Raldh2 +/ − mutantları Şşşt göstermediuzuvlardaki ekspresyon ( Şekil 8 K, L, ek), ifade eksikliğinin sadece uzuv gelişimindeki gecikmeden kaynaklanmadığını gösterir. SHH sinyallemesinin verimliliğini değerlendirmek için hedef genlerini Patched ( Ptc ) ( Goodrich ve diğerleri, 1996 , Marigo ve diğerleri, 1996b ) ve Gli1 ( Marigo ve diğerleri, 1996a ) analiz ettik. Her iki genin transkriptleri, mutant uzuvların çoğunluğunda (10/13), morfolojik olarak iyi kurtarılmışlarda bile zorlukla tespit edilebildi ( Şekil 8 M, N; veriler gösterilmemiştir). Mutantların çoğunda eşit olmayan transkript seviyeleri görüldü; sağ kol ve bacaklarda daha düşük ekspresyon görüldü ( Şekil 8 N). Bmp2'nin İfadesiBaşka bir SHH aşağı akış geni olan Por - / -'de yoktu veya çok düşüktü ; Hem E9.5 hem de E11.5'te Raldh2 +/ − mutant uzuv tomurcukları ( Şekil 8 O, P ve veriler gösterilmemiştir). Böylece Por – / – uzuv defektleri ; Raldh2 +/ − mutantları, FGF ve SHH sinyallemesindeki az çok ciddi eksikliklerle ilişkilidir.

            Por - / -'deki anormal uzuv desenlemesinin moleküler temelini daha da araştırdık ; E9.5 ve E11.5 arasındaki çeşitli Hox genlerinin ekspresyonunu analiz ederek Raldh2 +/ − uzuvları . Hoxd9'un E9.5 ve E10.5 uzuv tomurcuklarındaki ifadesi hem WT hem de bileşik mutantlarda benzerdi (veriler gösterilmemiştir). Bununla birlikte, E11.5'te proksimal (stylopodal/zeugopodal) uzuv bölgelerinde ( Şekil 9 A ) mevcut olmak yerine , Hoxd9 ifadesi kesik Por - / -'nin ucuna kadar uzandı ; Raldh2 +/ − uzuv tomurcukları ( Şekil 9B). Normalde zeugopod ve distal otopodda iki alanda eksprese edilen Hoxd11 ( Şekil 9 C), E10.5 ve 11.5 mutant uzuvlarında distal uca uzanan tek bir alanda eksprese edildi ( Şekil 9 D ve veriler gösterilmemiştir) . Otopodda yüksek seviyelerde ve stilopodun arka kenarı boyunca daha düşük seviyelerde ve E11.5 WT uzuvlarının zeugopodunda (Şekil 9 E) ifade edilen Hoxd12 , Por - / -'de sürekli bir arka alanda ifade edildi ; Raldh2 +/ − uzuvlar, en uzak uçta daha yüksek seviyelere sahip ( Şekil 9 F). Hoxd13 ve Hoxa13WT uzuv tomurcuklarının muhtemel otopod bölgesinde E10.5'te ifade edilmeye başlar ( Şekil 9 G ve veriler gösterilmemiştir). E10.5'te bu genlerin ekspresyon seviyelerinin bileşik mutant uzuvlarda azaldığı görüldü (veriler gösterilmemiştir). Ayrıca, hem E10.5 hem de E11.5'te ekspresyon alanları Por - / -'nin arka ve distal kenarıyla sınırlıydı ; Raldh2 +/ − uzuv tomurcukları ( Şekil 9 H ve veriler gösterilmemiştir). Buna karşılık , normalde proksimal ekstremite mezenkimiyle sınırlı olan Meis2 ekspresyonu ( Şekil 9 I), E10.5 bileşik mutant ekstremitelerde distal mezenşimin çoğu boyunca uzanıyordu ( Şekil 9).J). Toplamda bu analiz Por − / − ; Raldh2 +/ − uzuvları anormal şekilde 'yakınlaştırılmıştır'.

            1. İndir : Tam boyutlu resmi indirin

            Şekil 9 . Por - / -'de anormal desenlenme ve artan retinoid sinyali ve Cyp26 gen ekspresyonu ; Raldh2 +/− uzuvlar. E11.75'te Hoxd9 (A, B), Hoxd11 (C, D), Hoxd12 (E, F), Hoxd13 (G, H, ana paneller) ve Hoxa13'ün (G, H, ek parçalar) yerinde hibridizasyonu ön ayaklar (sırt görünümleri). (I, J) E10.5 ön ayak tomurcuklarının enine kesitlerinde Meis2 yerinde hibridizasyon. (K, L) RARE-lacZ'yi barındıran embriyoların E10.5 (ekler) ve E11.5 (ana paneller) ön ayaklarının enine kesitleri üzerinde X-gal analizleritransgen. Kesikli çizgiler uzuv tomurcuğunun şeklini tanımlar. (M – P) Cyp26b1 ve Cyp26a1, sırasıyla E10.5 ön ayakları ve E11.5 tüm montajlarının enine kesitlerinde yerinde hibridizasyon. Yukarıda belirtilen embriyo genotipleri.
            Por − / − ;' deki moleküler anormalliklerin olup olmadığını araştırdık ; Raldh2 +/ - mutantları , E10.5 ve 11.5 uzuv tomurcuklarındaki RARE-lacZ transgen aktivitesini değerlendirerek anormal RA sinyalleme seviyeleriyle ilişkilidir . Her iki aşamada da RA raportör aktivitesi, bileşik mutantların uzuv tomurcukları boyunca çok daha uzaklara doğru uzanıyordu ve ayrıca WT uzuvları ile karşılaştırıldığında proksimal olarak anormal derecede yüksekti ( Şekil 9 K, L). Civciv embriyosunda Cyp26a1 ve Cyp26b1'in ekzojen RA uygulamasına yanıt verdiği gösterilmiştir ( Reijntjes ve diğerleri, 2003 , Reijntjes ve diğerleri, 2005).). Bu nedenle bileşik mutantlarda bu iki genin ifadesini kontrol ettik. Cyp26b1, E10.5 WT embriyolarının distal uzuv tomurcuğu mezenkimi boyunca dereceli bir şekilde eksprese edilir ( Şekil 9 M). Por − / −'deki dağılımı değişmedi ; Raldh2 +/ - ekstremite mezenkimi ( Şekil 9 M, N), ancak vasküler hücrelerde spesifik olarak yukarı doğru düzenlenmiştir ( Şekil 9 N'deki noktalı etiketlemeye bakın). Buna karşılık, Cyp26a1 , WT uzuvlarında E11.5'te anlamlı şekilde eksprese edilmezken ( Şekil 9 O), hem uzuv ektoderminde hem de mezenkiminde nispeten yüksek seviyelerde eksprese edildi.Por - / - ; Raldh2 +/ − mutantlar ( Şekil 9 P). Bu veriler Por - / -'de RA seviyelerinde artış ve/veya doku dağılımında değişiklik olduğu fikrini desteklemektedir ; Raldh2 +/ − mutantlar. Ancak mevcut durumda bu genlerin yukarı regülasyonu, POR fonksiyonunun eksikliği nedeniyle RA seviyelerini normalleştiren bir geri bildirim mekanizmasının tetiklenmesinde etkisiz olacaktır.

            Tartışma
            Embriyoda uygun retinoik asit homeostazisi için POR fonksiyonu gereklidir
            Por nakavt mutantlarının önceki karakterizasyonu ( Otto ve diğerleri, 2003 ), ana morfogenetik kusurları, RA seviyelerinin etkilendiği diğer fare mutantları üzerinde yapılan gözlemlerle tutarlı olan erken bir embriyonik ölümcül fenotipi ortaya çıkarmıştı ( Abu-Abed ve diğerleri, 2001 , Abu-Abed ve diğerleri, 2003 , Sakai ve diğerleri, 2001 , Yashiro ve diğerleri, 2004 ) veya gastrula/neurula aşamalarında fazla RA'nın uygulanmasını takiben WT fare embriyolarında ( Avantaggiato ve diğerleri, 1996 , Simeone ve diğerleri) ., 1995 ve buradaki referanslar). Ayrıca, HPLC analizi Por - / -'de anormal derecede yüksek bir RA/Retinol oranı ortaya çıkarmıştı.A vitamini eksikliği olan annelerden üretildiğinde embriyoların fenotipinin geliştiği bulunmuştur ( Otto ve ark., 2003 ). Bu gözlemler, embriyogenez sırasında POR'un ana rolünün, RA'yı metabolize eden CYP26 enzimlerinin düzgün fonksiyonuna izin vermek olduğu fikrine yol açtı.

            Bu çalışmada Por fonksiyon kaybının erken embriyodaki RA düzeylerini ve doku dağılımını etkilediğini göstermek için çeşitli yaklaşımlar kullandık . RA'ya duyarlı bir lacZ transgeninin aktivite modelini analiz ederek , zaten nörula aşamasından itibaren Por - / - mutantların, RA raportör transgeninin hem baş hem de kaudal bölgelere doğru ektopik aktivasyonu sergilediğini bulduk. Bunun, CYP26 enzimlerinin etkili metabolizma eksikliği nedeniyle anormal RA sinyallemesinden kaynaklanması muhtemeldir. Gerçekten de CYP26A1, posterior mezodermde gastrulasyon aşamalarında zaten mevcuttur ( Fujii ve diğerleri, 1997 ) ve işlevi daha sonra kuyruk tomurcuğu gelişimi sırasında gereklidir ( Abu-Abed ve diğerleri, 2001)., Abu-Abed ve diğerleri, 2003 , Sakai ve diğerleri, 2001 ). Hem CYP26A1 hem de C1, embriyonik kafa dokularında mevcuttur ve sonuçta üç CYP26 enziminin tümü, gelişmekte olan eşkenar dörtgende farklı ekspresyon modelleri sergiler ( Fujii ve diğerleri, 1997 , MacLean ve diğerleri, 2001 , Tahayato ve diğerleri, 2003 ). Toplamda, Por - / - embriyolardaki ektopik RA sinyalleme aktivitesi, bu enzimlerin bölgeye özgü metabolizmayı katalize edememesiyle açıklanabilir. Por - / - embriyonik fenotipin bireysel Cyp26'nın herhangi birinden çok daha şiddetli olması ilginçtir.fonksiyon kaybı fenotipleri ( Abu-Abed ve diğerleri, 2001 , Sakai ve diğerleri, 2001 ; H. Hamada, M. Petkovich, kişisel iletişim). Bu enzimlerin kısmen gereksiz rollere sahip olduğuna dair kanıtlar vardır (H. Hamada, kişisel iletişim) ve bu bakımdan Por - / - mutasyonunun etkileri, kombine Cyp2a1/b1/c1 kaybında gözlemlenebilecek olana benzer olabilir. işlev.

            Bununla birlikte, Por - / - embriyolarda RA raportör transgeninin, RA'nın normalde sinyal verdiği ve CYP26 enzimlerinin nispeten düşük düzeyde eksprese edildiği muhtemel gövde seviyelerinde anormal derecede yüksek bir aktivitesini gözlemlemek biraz beklenmedik bir durumdu . Bunun nedeni RA'nın, sefalik ve posterior mezoderm bölgelerinde yakındaki metabolik havuzların yokluğunda devam eden üretimi nedeniyle erken embriyoda birikmiş olması olabilir. Alternatif bir açıklama ise embriyoda CYP26 enzimlerine ek olarak diğer P450'lerin de mevcut olabileceği ve RA metabolizmasında rol oynayabileceğidir. İn vitro olarak, CYP1A1, CYP2C8, CYP2S1, CYP1B1 ve CYP3A7 dahil olmak üzere çeşitli insan sitokrom P450'lerinin RA'yı etkili bir şekilde hidroksile ettiği gösterilmiştir ( Chen ve diğerleri, 2000 ,Marill ve diğerleri, 2000 , McSorley ve Daly, 2000 ). Cyp1a1 ve Cyp2s1'in RT-PCR analiziyle E7 fare embriyolarında eksprese edildiği bulunmasınarağmen ( Choudhary ve diğerleri, 2005 ), bunların erken embriyonik ekspresyon modellerine ilişkin ayrıntılı bir rapor bulunmamaktadır. Mevcut sonuçlarımız daha ileri araştırmaları garanti etmektedir.

            Embriyonik retinoid seviyelerinin azaltılması Por - / - embriyolardaki vasküler kusurları kurtarır
            Aktif embriyonik retinoid seviyelerinin azaltılmasının Por - / - fenotipik kusurları kurtarıp kurtarmadığını işlevsel olarak araştırmak için iki bağımsız yaklaşım kullandık. Herhangi bir retinoid kaynağından yoksun tanımlanmış ortamda Por - / - embriyoların in vitro kültürü ve ayrıca Por - / -'de azalmış RA sentezi ; Raldh2 +/ − bileşik mutantların her ikisi de fenotipik kusurlarını iyileştirdi. Genetik kurtarma, hayatta kalma süresini uzattığı ve Por - / -E13.5'e kadar geri kazanılacak mutantlar. Bu, kurtarılmamış mutantlarda değerlendirilemeyen morfolojik ve moleküler değişikliklerin karakterizasyonuna olanak sağladı. Genetik olarak kurtarılan mutantların iki ana fenotipik özelliği, spina bifida ve Cyp26a1 - / - mutantlarınkine açıkça benzeyen kaudal kesik fenotipidir ( Abu-Abed ve diğerleri, 2001 , Sakai ve diğerleri, 2001 ), ayrıca uzuv Cyp26b1 - / - mutantlarının fenotipiyle tutarlı kusurlar (aşağıya bakın) ( Yashiro ve diğerleri, 2004)). Bu sonuçlar ayrıca, CYP26 fonksiyonu yoluyla embriyonik RA seviyelerinin uygun şekilde kontrol edilmesine izin verilmesinde POR'un öneminin altını çizmektedir. Hem embriyo kültüründe hem de genetik sistemlerde, vasküler sistemin oluşumunun ve/veya yeniden şekillenmesinin kısmen kurtarılmasının Por - / - mutantlarının gelişmiş canlılığını açıkladığını gösteren kanıtlar sağlıyoruz. Raldh2 - / - mutantları üzerinde yürütülen son çalışmalar, kılcal damar pleksisinin erken oluşumu meydana gelmesine rağmen, RA eksikliğinin yolk kesesi ve intra-embriyonik damar ağının yeniden şekillenmesini ve desenlenmesini etkilediğini göstermiştir ( Bohnsack ve diğerleri, 2004 , Lai ve diğerleri, 2003 ). Por'un Etkisizleştirilmesiaynı zamanda vaskülogenezdeki erken adımları da etkiler ( Otto ve diğerleri, 2003 ). Bu, CYP26 metabolize edici aktivitenin eksikliği nedeniyle olası vasküler endoteldeki uygunsuz RA sinyallemesinden kaynaklanabilir. Aslında hem Cyp26a1 hem de Cyp26b1 , vasküler endotelin geliştirilmesinde eksprese edilir ( MacLean ve diğerleri, 2001 , Reijntjes ve diğerleri, 2005 ) ve yakın zamanda Cyp26a1 - / - embriyolarda vaskülogenezde tam olmayan penetrant kusurlara ilişkin kanıtlar elde ettik (VR, PD, yayınlanmamış veriler).

            Burada, Hif1α ve Arnt gibi kılcal damar pleksi gelişimi ve eritropoez için kritik olan erken faktörlerin kusurlu ifadesinin Por - / - embriyolarda retinoid seviyelerinin düşürülmesiyle kısmen kurtarıldığını gösteriyoruz . Vasküler gelişim için temel olan Hif1α'nın aşağı akış hedef geni Flk1 ( Shalaby ve diğerleri, 1995 ), kültürlenmiş ve Raldh2 haploinleri yeterli Por - / −'nin ana kan damarlarındaki protein ekspresyonuyla görüldüğü gibi kurtarıldı.mutantlar. Bununla birlikte, endotelyal işaretleyici PECAM-1'in yanı sıra ekspresyonunun analizi, ağın dallarının kültürlenmiş ve bileşik mutantlarda anormal şekilde dilate olduğunu ortaya çıkardı; bu, RA homeostazisinin sadece vaskülogenez için değil aynı zamanda yeniden yapılanma için de gerekli olduğunu ortaya koydu. Yeniden modellenmiş bir damar ağının oluşturulmasındaki gelişme Por - / -'de daha çarpıcıydı ; Kültürlenmiş Por - / - embriyolarla karşılaştırıldığında Raldh2 +/ − embriyolar . Bu, normal vasküler gelişime izin vermek için RA metabolizmasının E9.5'ten önce kontrol edilmesi gerektiğini göstermektedir.

            Ön kafa hücrelerini RA sinyallemesinden korumak için Por fonksiyonu gereklidir
            RA'nın gastrulasyon sırasında etkili olan 'posteriorizasyon' faktörlerinden biri olduğu ve olası CNS'de posterior (arka beyin ve omurilik) kaderlerin üretilmesinden sorumlu olduğu bilinmektedir ( Avantaggiato ve diğerleri, 1996 , Maden, 2002 , Morriss-Kay ve diğerleri. , 1991 , Simeone ve diğerleri, 1995 ). Ayrıca, bu tür erken aşamalarda rostral baş gelişiminin, RA reseptörlerinin (RAR'ler) ligandsız (baskılayıcı) bir durumda olmasını gerektirdiğine dair kanıtlar vardır ( Koide ve diğerleri, 2001).). RA yayılabilir bir molekül olduğundan, embriyonun ön bölgelerindeki gen hedeflerini uygunsuz şekilde aktive etmesini önlemek için bazı mekanizmaların gelişmiş olması mümkündür. Ön embriyonik epiblast ve baş kıvrımı nörektoderminde geçici olarak eksprese edilen CYP26A1 enzimi böyle bir işleve katılabilir. Bununla birlikte, Cyp26a1 - / - fare mutantlarında rostral kafa gelişimi nispeten normaldir ( Abu-Abed ve diğerleri, 2001 , MacLean ve diğerleri, 2001 , Sakai ve diğerleri, 2001 ), büyük olasılıkla başka bir enzimin (CYP26C1) eksprese edilmesi nedeniyle erken kafa mezenkimi ( Reijntjes ve diğerleri, 2005 , Sirbu ve diğerleri, 2005 ) Cyp26a1'i telafi edebilirfonksiyon eksikliği. Aslında bileşik Cyp26a1/c1 null mutantları, Por - / - embriyolarınkilerle tutarlı ciddi kafa kusurları sergiler (H. Hamada, kişisel görüşme).

            Moleküler analizimiz, POR'un yokluğunda en ön nöral yapıların bulunmadığını ( En2 ) veya azaldığını ( Otx2 , Foxg1 ) ve bazı arka beyin moleküler belirteçlerinin anteriora doğru uzatıldığını ( Hoxb1 ) göstermektedir. Bu kusurlar, geç gastrulasyon aşamasında WT embriyolarının RA tedavisinden sonra gözlemlenenleri taklit ettiğinden ( Avantaggiato ve diğerleri, 1996 ) ve Raldh2 +/ - bileşik mutantlarda RA seviyelerinin düşürülmesiyle kısmen kurtarıldıklarından , verilerimiz endojen bir mekanizmanın olduğunu göstermektedir. Ön kafa bölgesini RA'nın 'posteriorizasyon' etkilerinden korumak için var olduğunu ve P450 enzimlerinin metabolize edici aktivitesine dayandığını söyledi.

            Hem proksimo-distal hem de ön-arka eksenler boyunca uzuv desenlemesi için POR gereklidir


            Çalışmamız, POR fonksiyonunun uzuv gelişiminin farklı aşamalarında gerekli olduğunu ortaya koydu. Böylece, E9.5 kültürlü ve genetik olarak kurtarılmış Por - / - embriyolarda RA seviyelerinin düşürülmesinin, uzuv tomurcuklanmasına ve apikal ektodermal çıkıntının (AER) oluşumuna izin verdiğini gösterdik . Daha önceki çalışmalar, civciv embriyolarındaki tomurcuk öncesi mezenşimdeki RA fazlasının uzuv oluşumunu engelleyebileceğini göstermiştir ( Wilde ve diğerleri, 1987 ). Bu çalışmayla uyumlu olarak, kurtarılmamış Por - / - mutantların, Fgf8 ifadesinin eksikliğinde görüldüğü gibi bir AER oluşturmadığını gösterdik . Bununla birlikte, Tbx5 ve Fgf10 gibi uzuv başlangıcının önemli belirleyicilerinin bulunduğu RA eksikliği olan embriyolardan farklı olarak, lateral plaka mezoderminde uygun şekilde uyarılmamıştır ( Mic ve diğerleri, 2004 ), Por - / - mutantlarında bu genler doğru şekilde ifade edilmiştir. Por − / −'de RA seviyelerinin azaltılması ; Raldh2 +/ - bileşik mutantları, E10.5'te Mkp3'ün indüksiyonu ile görüldüğü gibi, mezenşimde Fgf8 ekspresyonunun ve sinyallemenin başlamasına izin verdi. Bu aşamada Por – / – uzuv tomurcuklarının sırtı düzensiz bir şekle sahipti. Bu , AER'nin olgunlaşmasında rol oynayan azalmış Bmp2 ifadesinin bir sonucu olabilir (Pizette ve diğerleri, 2001 , Pizette ve Niswander, 1999 ). Anormal AER oluşumu ve/veya bakımı, mutant uzuvların kesilmesine ve mezenkim içindeki hücre ölümünün artmasına neden olabilir.

            Analizlerimiz ayrıca, uzuv tomurcuğunun proksimo-distal (PD) ekseni boyunca farklı stilopodal, zeugopodal ve otopodal bölümlerin oluşumu için POR'a bağlı RA bozulmasının gerekli olduğunu gösterdi. Por - / -' de gözlenen en şiddetli uzuv fenotipleri ; Raldh2 +/ − mutantları Yashiro ve ark. (2004) Cyp26b1 - / - mutantları için . Ayrıca, bir dizi benzer moleküler değişiklik, her iki mutant tipinde de uzuv tomurcuğunun çoğunda anormal bir 'yakınlaşma' olduğunu gösterir (bkz. Yashiro ve diğerleri, 2004 ). Bununla birlikte, kürek kemiği Cyp26b1'de mevcutken -/ − uzuvlar, Por − / −'nin ∼ %70'indebüyük ölçüde etkilenmiştir; Raldh2 +/ − mutantlar. Bu, yalnızca uzuv tomurcuklarında değil aynı zamanda kanatta da RA sinyalindeki artışın sonucu olabilir. Ayrıca verilerimiz Por − / −'de gelişmiş RA sinyalinin olduğunu göstermektedir ; Raldh2 +/ − mutantları aynı zamanda uzuv ön-arka (AP) ekseninin oluşumunu da etkiler. AP polaritesinin önemli bir belirleyicisi olan Shh'nin ifadesi ( Charité ve diğerleri, 2000 , Chiang ve diğerleri, 2001 ; ve buradaki referanslar),Por - / - ; Raldh2 +/ - mutantları ve SHH aşağı akış hedefi Gli1 ( Marigo ve diğerleri, 1996a ), bileşik mutant uzuv tomurcuklarının çoğunda düşük seviyelerde eksprese edildi. RA fazlalığı aslında Shh ifadesinin uyarılmasından önce uzuv tomurcuğunun AP modelini etkileyebilir . Aslında, AP ön modelini kontrol ettiği düşünülen dHand ( Fernandez-Teran ve diğerleri, 2000 , te Welscher ve diğerleri, 2002 ), Por mutantlarının yanal plaka mezoderminde yoktu ve bileşik mutant uzuvlarda yetersiz kurtarıldı.

            Bozulmuş RA sinyallemesinin bir başka çarpıcı özelliği, burada Por - / -'de Mkp3 , Shh ve Gli1 dahil olmak üzere çeşitli faktörler için gösterildiği gibi sol ve sağ uzuv tomurcukları arasındaki asimetridir ; Raldh2 +/ − mutantlar. Sol-sağ asimetrik uzuv fenotipleri daha önce RA eksikliği olan Raldh2 - / - mutantlarında rapor edilmişti ( Mic ve diğerleri, 2004 , Niederreither ve diğerleri, 2002b)). RA eksikliği olan mutantlarda, sürekli olarak en çok sol tomurcuklar etkilenirken, mevcut durumda en şiddetli moleküler değişiklikler sağ tomurcuklarda görülmektedir. Bu asimetrilerin, yakın zamanda önerildiği gibi embriyonik paraksiyal (presomitik) ve lateral mezoderm boyunca RA'ya bağlı sol-sağ stabilize edici aktivitenin bozulmasını yansıtıp yansıtmadığı ( Kawakami ve diğerleri, 2005 , Vermot ve diğerleri, 2005 , Vermot ve Pourquié, 2005 ) , ele alınması gereken bir konudur.

            son sözler
            Bu çalışma, erken ölümcül Por fonksiyon kaybı fenotipinin anormal embriyonik RA sinyallemesiyle bağlantılı olduğunu ve embriyoya verilen (veya sentezlenen) retinoid seviyelerinin azaltılmasıyla en azından kısmen kurtarılabileceğini göstermiştir . Kurtarma deneylerimiz yoluyla karakterize edilen yeni fenotipik kusurlar, bilinen CYP26 enzimlerinin gelişimin sonraki aşamalarındaki (örneğin sefalik, arka beyin, uzuv veya kuyruk tomurcuğu bölgelerindeki) kusurlu fonksiyonuyla tutarlıdır. Kurtarılmamış Por - / −'nin ciddi fenotipinin olup olmadığı henüz bilinmiyor.bu sadece üç CYP26'nın tamamının kombine inaktivasyonunun sonucudur ve/veya henüz karakterize edilmemiş erken gelişimsel fonksiyonlara sahip diğer P450 enzim(ler)i ek olarak dahil olabilirse. Fare sitokrom P450 genlerinin karşılaştırmalı ekspresyon profili, Cyp1a1 , Cyp2r1 ve Cyp2s1 dahil olmak üzere birçok P450'nin transkriptlerinin erken fare gelişiminde eksprese edildiğini gösterdi ( Choudhary ve diğerleri, 2003 , Choudhary ve diğerleri, 2005 ). Bununla birlikte, ayrıntılı uzay-zamansal ifade verilerinin ve birleştirilmiş nakavt modellerinin yokluğunda, bazı Por - / -fenotipik özellikler CYP26 dışı enzimlerin bozulmuş aktivitesinden kaynaklanabilir.

            Bununla birlikte, fonksiyonel bir mikrozomal sitokrom P450 sisteminin yokluğunun burada açıklanan ciddi gelişimsel kusurlara yol açması, P450'lerin teratojenitedeki rolü hakkında soruları gündeme getirmektedir. P450'lerin inhibisyonunun neden olduğu klinik olarak olumsuz ilaç reaksiyonlarının birçok örneği vardır ( Guengerich, 1997 , Tanaka, 1998 ) ve P450 enzimlerinin ilaçlar veya çevresel kirleticiler tarafından bu şekilde inhibisyonunun RA'yı teratojenik seviyelere yükseltebilmesi mümkündür. P450 aracılı RA bozulmasını engelleyen bileşiklerin araştırılması, düşük doğumların ve/veya doğum kusurlarının ardındaki bilinmeyen mekanizmalar hakkında fikir verebilir.

            Teşekkür
            Prof'larımıza minnettarız. Tartışmalar ve sürekli destek için Pierre Chambon'a, RARE-hsp68-lacZ fareleri sağladığı için Janet Rossant'a ve hayvancılık için Dianne Carrie ve Alayna Rodgers'a teşekkür ederiz. HPLC analizinde yardımlarından dolayı Thomas Gundersen'e ve taramalı elektron mikroskobunda yardımlarından dolayı Martin Kierans'a (Yüksek Çözünürlük ve İşleme Merkezi, Wellcome Trust Biocentre, Dundee) teşekkür ederiz. Bu çalışma CNRS, INSERM, Ministère Français de la Recherche (ACI 03-2-490) ve Institut Universitaire de France (PD'ye), The Wellcome Trust (Grant numarası 072523, RW ve CT'ye) fonları tarafından desteklenmiştir. , MRC ve The Royal Society (CT'ye).

            Referanslar
            1. Abu-Abed ve diğerleri, 2001
              S. Abu-Abed , P. Dolle , D. Metzger , B. Beckett , P. Chambon , M. Petkovich
              Retinoik asit metabolize eden enzim CYP26A1, normal arka beyin deseni, vertebral kimlik ve arka yapıların gelişimi için gereklidir.
              Genler Dev. , 15 ( 2001 ) , s. 226 - 240
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            2. Abu-Abed ve diğerleri, 2003
              S. Abu-Abed , P. Dolle , D. Metzger , C. Wood , G. MacLean , P. Chambon , M. Petkovich
              Ölümcül RA seviyeleriyle gelişme: Rarg'ın genetik ablasyonu, Cyp26a1'den yoksun farelerin yaşayabilirliğini geri kazanabilir
              Geliştirme , 130 ( 2003 ) , s. 1449 - 1459
              Scopus'ta görüntüleGoogle Akademik
            3. Avantaggiato ve diğerleri, 1996
              V. Avantaggiato , D. Acampora , F. Tuorto , A. Simeone
              Retinoik asit, rostral merkezi sinir sisteminin aşamaya özgü yeniden şekillenmesini indükler
              Dev. Biyol. , 175 ( 1996 ) , s. 347 - 357
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            4. Blomhoff, 1994
              R.Blomhoff _
              A vitamininin taşınması ve metabolizması
              Nutr. Rev. , 52 ( 1994 ) , s. S13 - S23
              Scopus'ta görüntüleGoogle Akademik
            5. Bober ve diğerleri, 1994
              E. Bober , T. Franz , HH Arnold , P. Gruss , P. Tremblay
              Ekstremite kaslarının gelişimi için Pax-3 gereklidir: dermomyotomal kas progenitör hücrelerinin göçünde olası bir rol
              Geliştirme , 120 ( 1994 ) , s. 603 - 612
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            6. Bohnsack ve diğerleri, 2004
              BL Bohnsack , L. Lai , P. Dolle , KK Hirschi
              Vasküler yeniden yapılanmayı ve endotel hücre proliferasyonunu bağımsız olarak düzenleyen retinoik asitin aşağısındaki sinyal hiyerarşisi
              Genler Dev. , 18 ( 2004 ) , s. 1345 - 1358
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            7. Chambon, 1996
              P. Chambon
              Retinoik asit reseptörlerinin on yıllık moleküler biyolojisi
              FASEB J. , 10 ( 1996 ) , s. 940 - 954
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            8. Charité ve diğerleri, 2000
              J. Charité , DG McFadden , EN Olson
              BHLH transkripsiyon faktörü dHAND, Sonic hedgehog ekspresyonunu ve uzuv gelişimi sırasında polarize edici aktivite bölgesinin oluşumunu kontrol eder
              Geliştirme , 127 ( 2000 ) , s. 2461 - 2470
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            9. Chen ve diğerleri, 2000
              H. Chen , AG Fantel , MR Juchau
              İnsan fetal karaciğer dokularında retinoik asitlerin cyp3a7 ile 4-hidroksilasyonunun katalizlenmesi
              İlaç Metab. İmha. , 28 ( 2000 ) , s. 1051 - 1057
              Scopus'ta görüntüleGoogle Akademik
            10. Chiang ve diğerleri, 2001
              C. Chiang , Y. Litingtung , MP Harris , BK Simandl , Y. Li , PA Beachy , JF Fallon
              Uzuv ön modelinin tezahürü: sonik kirpi fonksiyonunun yokluğunda uzuv gelişimi
              Dev. Biyol. , 236 ( 2001 ) , s. 421 - 435
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            11. Chotteau-Lelièvre ve diğerleri, 2006
              A. Chotteau-Lelièvre , P. Dollé , F. Gofflot
              Radyoaktif ve radyoaktif olmayan etiketli problarla yerinde hibridizasyon kullanılarak fare genlerinin ekspresyon analizi
              IA Darby (Ed.) , Methods Mol. Biol., In Situ Hibridizasyon Protokolleri ( Üçüncü baskı ) , Humana Press, Totowa , Hewitson, TD ( 2006 ) , s. 61 - 87
              Scopus'ta görüntüleGoogle Akademik
            12. Choudhary ve diğerleri, 2003
              D. Choudhary , I. Jansson , JB Schenkman , M. Sarfarazi , I. Stoilov
              Embriyonik ve yetişkin dokularda 40 fare sitokrom P450 geninin karşılaştırmalı ekspresyon profili
              Arch. Biyokimya. Biyofiz. , 414 ( 2003 ) , s. 91 - 100
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            13. Choudhary ve diğerleri, 2005
              D. Choudhary , I. Jansson , I. Stoilov , M. Sarfarazi , JB Schenkman
              Gelişim sırasında ve farklı yetişkin dokularında fare ve insan CYP ortolog aileleri 1-4'ün ifade modelleri
              Arch. Biyokimya. Biyofiz. , 436 ( 2005 ) , s. 50 - 61
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            14. Dickinson ve diğerleri, 2002
              RJ Dickinson , MC Eblaghie , SM Keyse , GM Morriss-Kay
              Morfogenez ve erken organogenez sırasında fare embriyolarında ERK'ya özgü MAP kinaz fosfataz PYST1/MKP3'ün ekspresyonu
              Mekanik Dev. , 113 ( 2002 ) , s. 193 - 196
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            15. Fernandez-Teran ve diğerleri, 2000
              M. Fernandez-Teran , ME Piedra , IS Kathiriya , D. Srivastava , JC Rodriguez-Rey , MA Ros
              Uzuv tomurcuğunun ön-arka polarizasyonunda dHAND'ın rolü: Sonik kirpi yolu için çıkarımlar
              Geliştirme , 127 ( 2000 ) , s. 2133 - 2142
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            16. Fujii ve diğerleri, 1997
              H. Fujii , T. Sato , S. Kaneko , O. Gotoh , Y. Fujii-Kuriyama , K. Osawa , S. Kato , H. Hamada
              Gelişmekte olan fare embriyolarında farklı şekilde eksprese edilen yeni bir P450 ile retinoik asidin metabolik olarak etkisizleştirilmesi
              EMBO J. , 16 ( 1997 ) , s. 4163 - 4173
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Scopus'ta görüntüleGoogle Akademik
            17. Ghanayem ve diğerleri, 2000
              BI Ghanayem , H. Wang , S. Sumner
              Kimyasal metabolizmayı, toksisiteyi ve kanserojenliği incelemek için sitokrom P-450 geni nakavt farelerin kullanılması
              Toksikol. Pathol. , 28 ( 2000 ) , s. 839 - 850
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            18. Goodrich ve diğerleri, 1996
              LV Goodrich , RL Johnson , L. Milenkoviç , JA McMahon , MP Scott
              Sineklerden farelere kirpi/yamalı sinyal yolunun korunması: Hedgehog tarafından fare yamalı bir genin uyarılması
              Genler Dev. , 10 ( 1996 ) , s. 301 - 312
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            19. Guengerich, 1997
              FP Guengerich
              İlaç-ilaç etkileşimlerinde sitokrom P450 enzimlerinin rolü
              Av. Farmakol. , 43 ( 1997 ) , s. 7 - 35
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            20. Hasler, 1999
              Hasler, JA (1999). Sitokrom P450'nin farmakogenetiği. Mol Yönleri Med 20, 12–24, 25–137
              Google Akademik
            21. Hawke ve diğerleri, 2003
              TJ Hawke , AP Meeson , N. Jiang , S. Graham , K. Hutcheson , JM DiMaio , DJ Garry
              p21, iskelet kasının yenilenmesinde normal miyojenik progenitör hücre fonksiyonu için gereklidir
              Am. J. Physiol.: Cell Physiol. , 285 ( 2003 ) , s. C1019 - C1027
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            22. Joyner, 1996
              AL Joyner
              Engrailed, Wnt ve Pax genleri orta beyin-arka beyin gelişimini düzenler
              Trendler Genet. , 12 ( 1996 ) , s. 15 - 20
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            23. Kawakami ve diğerleri, 2005
              Y. Kawakami , A. Raya , RM Raya , C. Rodriguez-Esteban , JC Belmonte
              Retinoik asit sinyallemesi, zebra balığı embriyosunda sol-sağ asimetrik desenleme ve iki taraflı simetrik somitogenezi birbirine bağlar
              Doğa , 435 ( 2005 ) , s. 165 - 171
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            24. Koide ve diğerleri, 2001
              T. Koide , M. Downes , RA Chandraratna , B. Blumberg , K. Umesono
              Kafa oluşumu için RAR sinyalinin aktif olarak bastırılması gerekir
              Genler Dev. , 15 ( 2001 ) , s. 2111 - 2121
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            25. Lai ve diğerleri, 2003
              L. Lai , BL Bohnsack , K. Niederreither , KK Hirschi
              Retinoik asit, vaskülogenez sırasında endotel hücre proliferasyonunu düzenler
              Geliştirme , 130 ( 2003 ) , s. 6465 - 6474
              Scopus'ta görüntüleGoogle Akademik
            26. Lennon ve diğerleri, 1996
              G. Lennon , C. Auffray , M. Polymeropoulos , MB Soares
              IMAGE Konsorsiyumu: genomların ve bunların ifadelerinin entegre bir moleküler analizi
              Genomics , 33 ( 1996 ) , s. 151 - 152
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            27. Liu ve Joyner, 2001
              A. Liu , AL Joyner
              EN ve GBX2, fare orta/arka beyin bölgesinin modellenmesinde FGF8'in aşağı akışında önemli roller oynar
              Geliştirme , 128 ( 2001 ) , s. 181 - 191
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            28. MacLean ve diğerleri, 2001
              G. MacLean , S. Abu-Abed , P. Dolle , A. Tahayato , P. Chambon , M. Petkovich
              Yeni bir retinoik asit metabolize eden sitokrom P450, Cyp26B1'in klonlanması ve erken fare gelişimi sırasında Cyp26A1 ile karşılaştırmalı ekspresyon analizi
              Mekanik Dev. , 107 ( 2001 ) , s. 195 - 201
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            29. Maden, 2002
              M.Maden _
              Merkezi sinir sisteminin gelişiminde retinoid sinyali
              Nat. Rev., Neurosci. , 3 ( 2002 ) , s. 843 - 853
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            30. Marigo ve diğerleri, 1996a
              V. Marigo , RL Johnson , A. Vortkamp , ​​CJ Tabin
              Sonik kirpi, uzuv gelişimi sırasında GLI ve GLI3'ün ekspresyonunu farklı şekilde düzenler
              Dev. Biyol. , 180 ( 1996 ) , s. 273 - 283
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            31. Marigo ve diğerleri, 1996b
              V. Marigo , MP Scott , RL Johnson , LV Goodrich , CJ Tabin
              Kirpi sinyallemesinde koruma: Gelişmekte olan uzuvda Sonic hedgehog tarafından tavuk yamalı bir homologun indüksiyonu
              Geliştirme , 122 ( 1996 ) , s. 1225 - 1233
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            32. Marill ve diğerleri, 2000
              J. Marill , T. Cresteil , M. Lanotte , GG Chabot
              All- trans -retinoik asit ana metabolitlerinin oluşumunda rol oynayan insan sitokrom P450'lerin tanımlanması
              Mol. Farmakol. , 58 ( 2000 ) , s. 1341 - 1348
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            33. Martinez ve diğerleri, 1999
              S. Martinez , PH Crossley , I. Cobos , JL Rubenstein , GR Martin
              FGF8, Otx2 ekspresyonu üzerinde baskılayıcı bir etki yoluyla ektopik bir istmik organizatörün oluşumunu ve istmoserebellar gelişimi indükler
              Geliştirme , 126 ( 1999 ) , s. 1189 - 1200
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            34. Martinez-Barbera ve diğerleri, 2001
              JP Martinez-Barbera , M. Signore , PP Boyl , E. Puelles , D. Acampora , R. Gogoi , F. Schubert , A. Lumsden , A. Simeone
              Anterior nöroektodermin bölgeselleşmesi ve ön beyin ve orta beyini indükleyen aktivitelere yanıt verme yeterliliği, OTX2 ve GBX2 arasındaki karşılıklı antagonizmaya bağlıdır.
              Geliştirme , 128 ( 2001 ) , s. 4789 - 4800
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            35. McSorley ve Daly, 2000
              LC McSorley , AK Daly
              All- trans -retinoik asit 4-hidroksilasyonuna katkıda bulunan insan sitokrom P450 izoformlarının tanımlanması
              Biyokimya. Farmakol. , 60 ( 2000 ) , s. 517 - 526
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            36. Mic ve diğerleri, 2004
              FA Mic , IO Sirbu , G. Duester
              Raldh2 tarafından kontrol edilen retinoik asit sentezi, uzuv tomurcuğu başlangıcı için erken ve daha sonra apikal ektodermal sırt oluşumu sırasında proksimodistal bir sinyal olarak gereklidir.
              J. Biol. Kimya , 279 ( 2004 ) , s. 26698 - 26706
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            37. Moore-Scott ve diğerleri, 2003
              BA Moore-Scott , J. Gordon , CC Blackburn , BG Condie , NR Manley
              Orta gebelik fare embriyoları için yeni serumsuz in vitro kültür tekniği
              Genesis , 35 ( 2003 ) , s. 164 - 168
              Scopus'ta görüntüleGoogle Akademik
            38. Morriss-Kay ve diğerleri, 1991
              GM Morriss-Kay , P. Murphy , RE Hill , DR Davidson
              Retinoik asit fazlalığının Hox-2.9 ve Krox-20 ekspresyonu ve fare embriyolarının arka beynindeki morfolojik segmentasyon üzerindeki etkileri
              EMBO J. , 10 ( 1991 ) , s. 2985 - 2995
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Çapraz ReferansGoogle Akademik
            39. Niederreither ve Dollé, baskıda
              Niederreither, K., Dollé, P., baskıda. Gelişim sırasında retinoik asit sinyalinin moleküler aracıları. Av. Dev. Biyoloji.
              Google Akademik
            40. Niederreither ve diğerleri, 1999
              K. Niederreither , V. Subbarayan , P. Dollé , P. Chambon
              Embriyonik retinoik asit sentezi, erken fare implantasyon sonrası gelişimi için gereklidir
              Nat. Genet. , 21 ( 1999 ) , s. 444 - 448
              Scopus'ta görüntüleGoogle Akademik
            41. Niederreither ve diğerleri, 2000
              K. Niederreither , J. Vermot , B. Schuhbaur , P. Chambon , P. Dollé
              Fare embriyosunda retinoik asit sentezi ve arka beyin desenlenmesi
              Geliştirme , 127 ( 2000 ) , s. 75 - 85
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            42. Niederreither ve diğerleri, 2002a
              K. Niederreither , S. Abu-Abed , B. Schuhbaur , M. Petkovich , P. Chambon , P. Dollé
              Retinoik asidin oksidatif türevlerinin, fare gelişimi sırasında retinoid sinyallemesine dahil olmadığına dair genetik kanıt
              Nat. Genet. , 31 ( 2002 ) , s. 84 - 88
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Scopus'ta görüntüleGoogle Akademik
            43. Niederreither ve diğerleri, 2002b
              K. Niederreither , J. Vermot , B. Schuhbaur , P. Chambon , P. Dollé
              Farede ön ayak büyümesi ve ön-arka desenlenme için embriyonik retinoik asit sentezi gereklidir
              Geliştirme , 129 ( 2002 ) , s. 3563 - 3574
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            44. Otto ve diğerleri, 2003
              DM Otto , CJ Henderson , D. Carrie , M. Davey , TE Gundersen , R. Blomhoff , RH Adams , C. Tickle , CR Wolf
              Erken embriyogenezde sitokrom p450 sisteminin yeni rollerinin belirlenmesi: vaskülogenez ve retinoik asit homeostazisi üzerindeki etkiler
              Mol. Hücre. Biyol. , 23 ( 2003 ) , s. 6103 - 6116
              Scopus'ta görüntüleGoogle Akademik
            45. Pizette ve Niswander, 1999
              S. Pizette , L. Niswander
              BMP'ler ekstremite apikal ektodermal sırtının yapısını ve fonksiyonunu olumsuz yönde düzenler
              Geliştirme , 126 ( 1999 ) , s. 883 - 894
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            46. Pizette ve diğerleri, 2001
              S. Pizette , C. Abate-Shen , L. Niswander
              BMP, apikal ektodermal çıkıntının indüksiyonu ve omurgalı uzuvdaki dorsoventral desenleme yoluyla proksimodistal büyümeyi kontrol eder
              Geliştirme , 128 ( 2001 ) , s. 4463 - 4474
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            47. Reijntjes ve diğerleri, 2003
              S. Reijntjes , E. Gale , M. Maden
              Civciv embriyosunda retinoik asit katabolize edici enzim CYP26B1'in ekspresyonu ve retinoik asit tarafından düzenlenmesi
              Gen İfadesi Desenler , 3 ( 2003 ) , s. 621 - 627
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            48. Reijntjes ve diğerleri, 2005
              S. Reijntjes , A. Blentic , E. Gale , M. Maden
              Morfojen sinyallemesinin kontrolü: gelişmekte olan embriyoda retinoik asit sentezi ve katabolizmasının düzenlenmesi
              Dev. Biyol. , 285 ( 2005 ) , s. 224 - 237
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            49. Ross ve diğerleri, 2000
              SA Ross , PJ McCaffery , UC Drager , LM De Luca
              Embriyonel gelişimde retinoidler
              Fizyol. Rev. , 80 ( 2000 ) , s. 1021 - 1054
              PDF'yi bulma...
              Bu makaleye erişim ücretsizdir.

              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            50. Rossant ve diğerleri, 1991
              J. Rossant , R. Zirngibl , D. Cado , M. Shago , V. Giguère
              Bir retinoik asit tepki elemanı-hsplacZ transgeninin ifadesi, fare embriyogenezi sırasında transkripsiyonel aktivitenin spesifik alanlarını tanımlar
              Genler Dev. , 5 ( 1991 ) , s. 1333 - 1344
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            51. Sakai ve diğerleri, 2001
              Y. Sakai , C. Meno , H. Fujii , J. Nishino , H. Shiratori , Y. Saijoh , J. Rossant , H. Hamada
              Retinoik asiti etkisizleştiren enzim CYP26, fare embriyosunda ön-arka eksen boyunca retinoik asidin eşit olmayan bir dağılımını oluşturmak için gereklidir.
              Genler Dev. , 15 ( 2001 ) , s. 213 - 225
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            52. Shalaby ve diğerleri, 1995
              F. Shalaby , J. Rossant , TP Yamaguchi , M. Gertsenstein , XF Wu , ML Breitman , AC Schuh
              Flk-1 eksikliği olan farelerde kan adası oluşumunun ve vaskülojenezin başarısızlığı
              Nature , 376 ( 1995 ) , s. 62 - 66
              Scopus'ta görüntüleGoogle Akademik
            53. Shen ve diğerleri, 2002
              AL Shen , KA O'Leary , CB Kasper
              Çoklu gelişimsel kusurlar ve embriyonik ölümcüllüğün mikrozomal NADPH-sitokrom P450 oksidoredüktaz kaybıyla ilişkisi
              J. Biol. Kimya , 277 ( 2002 ) , s. 6536 - 6541
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            54. Simeone ve diğerleri, 1995
              A. Simeone , V. Avantaggiato , MC Moroni , F. Mavilio , C. Arra , F. Cotelli , V. Nigro , D. Acampora
              Retinoik asit, rostral merkezi sinir sisteminin aşamaya özgü ön-arka dönüşümünü indükler
              Mekanik Dev. , 51 ( 1995 ) , s. 83 - 98
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            55. Sirbu ve diğerleri, 2005
              IO Sirbu , L. Gresh , J. Barra , G. Duester
              Retinoik asit aktivitesinin değişen sınırları arka beyin segmental gen ekspresyonunu kontrol eder
              Geliştirme , 132 ( 2005 ) , s. 2611 - 2622
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            56. Sporn ve Roberts, 1994
              MB Sporn , AB Roberts
              All- trans -retinoik asidin neden olduğu servikal displazi gerilemesi
              J. Natl. Kanser Enst. , 86 ( 1994 ) , s. 476 - 477
              Google Akademik
            57. Strobel ve diğerleri, 1995
              Strobel, HW Kawashima, H. Geng, J. Sequeira, D. Bergh, A. Hodgson, AV Wang, H. Shen, S., 1995. Beyin sitokrom P450'nin birden fazla formunun ifadesi. Toksikol. Lett. 82–83, 639–43.
              Google Akademik
            58. Tahayato ve diğerleri, 2003
              A. Tahayato , P. Dolle , M. Petkovich
              Cyp26C1, murin gelişimi sırasında arka beyinde, iç kulakta, birinci branşiyal arkta ve diş tomurcuklarında eksprese edilen yeni bir retinoik asit metabolize edici enzimi kodlar
              Gen İfadesi Desenler , 3 ( 2003 ) , s. 449 - 454
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            59. Tanaka, 1998
              E. Tanaka
              Klinik açıdan önemli farmakokinetik ilaç-ilaç etkileşimleri: sitokrom P450 enzimlerinin rolü
              J. Clin. Eczane. Orada. , 23 ( 1998 ) , s. 403 - 416
              Scopus'ta görüntüleGoogle Akademik
            60. Tanaka ve diğerleri, 2000
              M. Tanaka , MJ Cohn , P. Ashby , M. Davey , P. Martin , C. Tickle
              Fare ve civciv embriyolarında polarizasyon aktivitesinin ve uzuv oluşumu potansiyelinin dağılımı ve polidaktili ile olası ilişkiler
              Geliştirme , 127 ( 2000 ) , s. 4011 - 4021
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            61. te Welscher ve diğerleri, 2002
              P. te Welscher , M. Fernandez-Teran , MA Ros , R. Zeller
              GLI3 ve dHAND'ı içeren karşılıklı genetik düşmanlık, SHH sinyallemesinden önce omurgalı uzuv tomurcuğu mezenkimini hazırlar
              Genler Dev. , 16 ( 2002 ) , s. 421 - 426
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            62. Vermot ve Pourquié, 2005
              J. Vermot , O. Pourquié
              Retinoik asit omurgalı embriyolarında somitogenezi ve sol-sağ desenlenmeyi koordine eder
              Doğa , 435 ( 2005 ) , s. 215 - 220
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            63. Vermot ve diğerleri, 2005
              J. Vermot , J. Gallego Llamas , V. Fraulob , K. Niederreither , P. Chambon , P. Dollé
              Retinoik asit, fare embriyosunda somit oluşumunun iki taraflı simetrisini kontrol eder
              Bilim , 308 ( 2005 ) , s. 563 - 566
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            64. White ve diğerleri, 1997
              JA White , B. Beckett-Jones , YD Guo , FJ Dilworth , J. Bonasoro , G. Jones , M. Petkovich
              İnsan retinoik asit metabolize edici enzim hP450RAI'nin cDNA klonlaması, yeni bir sitokrom P450 ailesini tanımlar
              J. Biol. Kimya , 272 ( 1997 ) , s. 18538 - 18541
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            65. Wilde ve diğerleri, 1987
              SM Wilde , SE Wedden , C. Tickle
              Retinoidler, uzuv modelinde değişiklikler sağlamak için tomurcuk öncesi mezenşimi yeniden programlıyor
              Geliştirme , 100 ( 1987 ) , s. 723 - 733
              Makaleyi görüntüle
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik
            66. Wright ve diğerleri, 1995
              E. Wright , MR Hargrave , J. Christiansen , L. Cooper , J. Kun , T. Evans , U. Gangadharan , A. Greenfield , P. Koopman
              Sry ile ilişkili gen Sox9, fare embriyolarında kondrojenez sırasında eksprese edilir
              Nat. Genet. , 9 ( 1995 ) , s. 15 - 20
              Scopus'ta görüntüleGoogle Akademik
            67. Yashiro ve diğerleri, 2004
              K. Yashiro , X. Zhao , M. Uehara , K. Yamashita , M. Nishijima , J. Nishino , Y. Saijoh , Y. Sakai , H. Hamada
              Gelişmekte olan fare uzvunun proksimodistal desenlenmesi ve aşırı büyümesi için retinoik asit dağılımının düzenlenmesi gereklidir
              Dev. Hücre , 6 ( 2004 ) , s. 411 - 422
              Görünüm PDFMakaleyi görüntüleScopus'ta görüntüleGoogle Akademik
            68. Zhang ve diğerleri, 1999
              P. Zhang , C. Wong , D. Liu , M. Finegold , JW Harper , SJ Elledge
              p21(CIP1) ve p57(KIP2), miyogenin adımında kas farklılaşmasını kontrol eder
              Genler Dev. , 13 ( 1999 ) , s. 213 - 224
              PDF'yi bulma...
              Çapraz ReferansScopus'ta görüntüleGoogle Akademik

            Yorum yap


            • #7
              Fosfoenolpiruvat karboksikinaz ve olgunlaşma sırasında yumuşak meyve etindeki organik asitlerin katabolizmasındaki potansiyel rolü

              Franco Famiani 1, Niccolò GM Kültürü , Alberto Battistelli , Valeria Casulli , Primo Proetti , Alvaro Standardi , Zhi-Hui Chen , Richard C. Leegood , Robert P Walker
              Bağlantılar yıkılmak Üyelik
              • 1Dipartimento di Scienze Agrarie e Ambientali, Università degli Studi di Perugia, Borgo XX Giugno 74, I-06121 Perugia, İtalya.
              Soyut


              Üzüm ve domates üzerinde yapılan önceki çalışmalar, olgunlaşmanın başlangıcında etlerinde fosfoenolpiruvat karboksikinaz (PEPCK) bolluğunun arttığını ve bunun sitrat ve/veya malat içeriğindeki bir azalmayla örtüştüğünü göstermiştir. Dolayısıyla PEPCK, bu meyvelerin olgunlaşması sırasında organik asit anyonlarının katabolizmasında işlev görebilir. Bu çalışmada, yaban mersini, ahududu, kırmızı kuş üzümü ve çileklerin etinde, gelişimlerinin farklı aşamalarında PEPCK bolluğu belirlendi. Ayrıca etteki sitrat, malat, çözünür şekerler, izositrat liyaz, NADP-malik enzimi, fosfoenolpiruvat karboksilaz ve piruvat, ortofosfat dikinaz miktarlarındaki değişiklikler de belirlendi. Malat veya sitratın disimilasyonunun olmadığı çilek etinde PEPCK tespit edilmedi. Diğer meyvelerin etindeki PEPCK bolluğu olgunlaşma sırasında üzüm ve domatestekine benzer bir miktara yükseldi. Yaban mersini ve kırmızı kuş üzümünün etinde PEPCK, malatın disimilasyonu olduğunda en fazla miktarda bulunuyordu. Ahududu etinde PEPCK, malat ve sitratın disimilasyonu olduğunda en fazla miktarda mevcuttu. Bu sonuçlar, olgunlaşma sırasında bu meyvelerin etindeki sitrat ve/veya malatın disimilasyonunda PEPCK'nin rol oynadığı ile tutarlıdır. Bununla birlikte PEPCK, malat veya sitratın disimilasyonu olmadığında yaban mersini, ahududu ve kırmızı kuş üzümünün etinde de mevcuttu ve bu, PEPCK'nin ek işlevlere sahip olabileceği olasılığını artırıyor. Yaban mersininin diseksiyonu, hem PEPCK hem de fosfoenolpiruvat karboksilazın aynı hücrelerde mevcut olduğuna dair kanıt sağladı.

              Yorum yap

              Hazırlanıyor...
              X