Duyuru

Collapse
No announcement yet.

Siyah Pirinç, Pirinç, Reis, Oryza sativa

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Siyah Pirinç, Pirinç, Reis, Oryza sativa

    PİRİNÇ


    Bir Yıllık | 0,5-1,2m | 6-9 Aylar | Na | Tohumları

    Pirinç, Reis, Oryza sativa

    Familyası: Buğdaygillerden, Süssgraeser, Poaceae

    Drugları: Pirinç nişastası: Oryzae amylum
    Pirinç kabuğu: Oryzae pericarpium
    Pirinçten elde edilen nişasta ilaç sanayinde katkı maddesi olarak, to-humların etrafını saran gümüşsü zardan ise natürel ilaçlar yapılır.

    Giriş: Pirincin MÖ. 3500 yılından beri Tayland'da ekilen ve ana besin mad-desi olarak kullanılan bitki oradan Vietnam, Çin, Bangeldeş, ve Hindistan'a yayılmıştır. Türklerden Araplara oradan da Avrupa ve nihayet 17. yüzyılda Amerika'ya götürülerek orada yetiştirilmeye başlanmıştır. Hz. Aliy'e bir çocuk (İmam-ı Azam Ebu Hanife) bir tabakla pirinç pilavı ile kuzu kavurması, bir kâse ile de muhallebi getirir. Bir gün sonra tabak ve kâseyi almaya gelen çocuğa Hz. Ali Yemekler güzeldi fakat bu yemek buraların değil, siz Türkistanlı mısınız? Buraya geleli ne kadar oldu? Diye sorar. Bundan da pirincin Türkler tarafından çok eskilerden beri bilinen ve yemekleri yapılan bir tahıl olduğu anlaşılmaktadır. Günümüzde takriben 8000 pirinç türü mevcuttur. En yaygın olarak kullanılan pilavlık pirinç (sivri pirinç), yuvarlak pirinç (sütlaç pirinci), dağ pirinci, (siyah pirinç), ve natürel pirinci sayabiliriz.

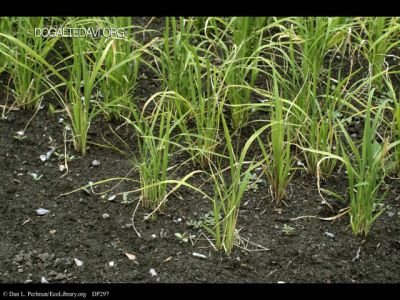
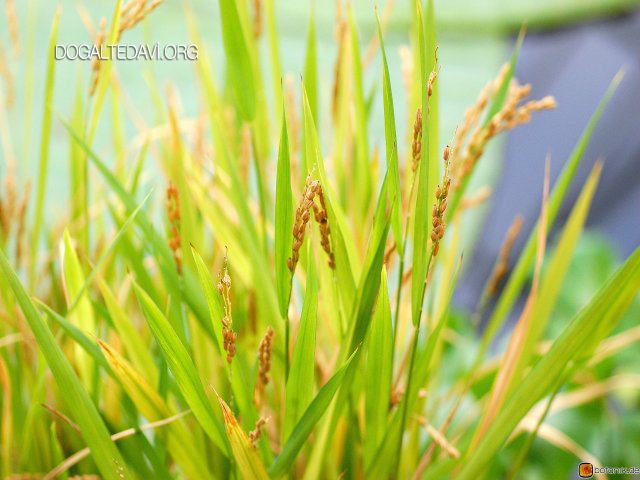
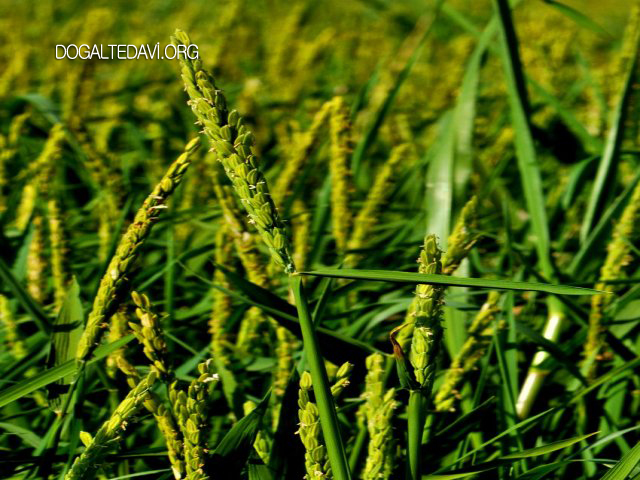
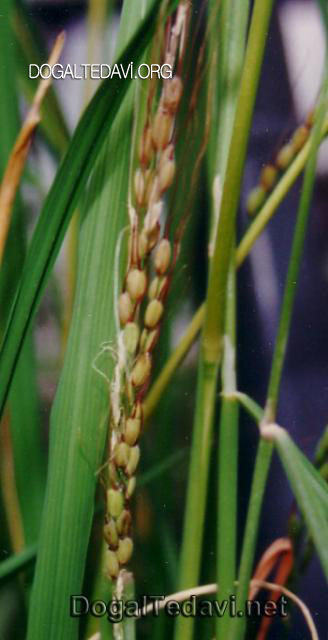
    Botanik: Pirinç 50-120cm boyunda bir yıllık dikine yükselen ve kökten çatallaşarak küme oluşturan bir bitkidir. Yaprakları 20-50cm uzunluğunda 1-2cm eninde bir şerit şeklinde olup sivrice yaprağın gövdeyle birleştiği kısımda boru şeklinde gövdeyi saran yaprak sapının uzantısı uzanır. Pirincin son yapraktan sonra 20-40cm uzunluğunda uzun bir sap üzerinde 2-5 başak demetinden meydana gelir ve tohumların ucunda kılçıklar bulunur. Pirincin tohumlarının uçlarındaki kılçıklar tohumları haşerelere ve kuşlara karşı korur.

    Yetiştirilmesi: Sulu yerlerde, bataklıklarda yetişen pirinç türleri olduğu gibi dağlarda yetişen türleri de vardır. Bir kg pirinç elde etmek için tak-riben 3000–10.000litre suya ihtiyaç vardır ve pirinci ektikten sonra sıcaklığın 30–38 derece arasında olması gerekir.

    Hasat zamanı:
    a) Sivri pirinç (pilavlık veya uzun pirinç diye de anılır) takriben 7mm uzunluğunda pişirildiğinde tane tane durur ve yapışmaz.
    b) Yuvarlak pirinç (sütlaç veya muhallebi pirinci diye de anılır) takriben 5mm uzunluğunda ve oval şekilde olup, pişirildiğinde yapış yapış olur, bu nedenle genellikle sütlaç veya muhallebi yapımında kullanılır.
    c) Natürel pirinç: Pirinç kabuğundan ayrıldıktan sonra ayrıca makine ile gümüşsü zarı ve çeneği de ayıklanırsa beyaz pirinç elde edilir. Sivri ve yuvarlak pirinç genellikle soyulmuş ve parlatılmış pirinçtir. Natürel pirinç diğerlerinden farklı olarak sarımtırak renktedir.
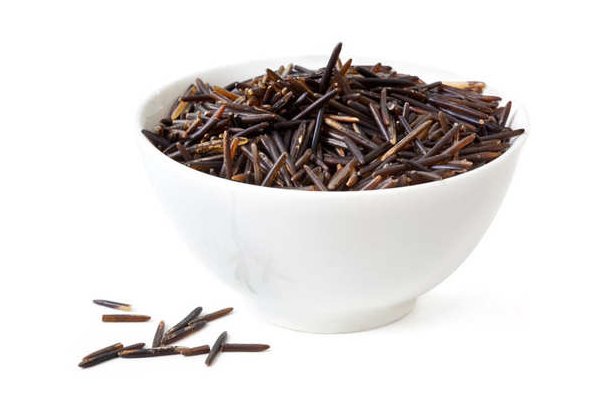
    d) Siyah pirinç: Bu pirinç Amerika'da genellikle Kızılderililer tarafından yetiştirilen ve yemeği yapılan pirinçtir.

    Birleşiminde:
    Pirinç tanesinde normal olarak yüksek oranda vitaminler, mineraller, mevcuttur, fakat parlatılırken bu önemli maddelerin çoğu yok olur. Pirinçte % 75 oranında nişasta, bulunur ve bunun % 20-30'unu amilazlar, % 70-80 amylopektin oluşturur. Amylozlar 1,4-alfa-glikozit bağı ile bağlı iken amylopektinlerde 1,4-alfa-glikozit veya 1,6-alfa-glikozit bağıda olabilir, yani karışıktır.
    1) Natürel pirinç % 7,5 protein, % 1,9 sabit yağ, % 0,9 lif, %1,2 mineraller, 100 gramda 0,44 mg B1-Vitamini, 0,05 mg B2-Vitamini ve 4 mg demir içerir.
    2) Parlatılmış (beyaz) pirinçte % 6,7 protein, % 0,4 sabit yağ, % 0,3 lif, % 0,5 mineraller ve 100 gramda 0,07 mg B1, 0,03 mg B2, 1,6 mg B3-Vitamini ve 0,5 mg demir içerir. Ayrıca phytin içerir.

    Alöron tabakası; Eskiden pek değerlendirilmeyen ve hayvan yemi olarak kullanılan gümüşsü zar (alöron tabakası) günümüzde natürel ilaç yapımında kullanılmaktadır. 100gramında;
    a) Vitaminlerden: 36,50mg E, 570mikrogram provitamin A, 83mikrog folikasit, 3mg b1, 0,04mg B2, 43mg B3, 7mg B5 (patotikasit), 21mg C, 25mg D, 0,49mg B6, 0, 70mikro g., 83mg K ve 5,50mikrog., H (biotin) Vitamini içerir.
    b) Minerallerden: 2,083g fosfor, 1,885g potasyum, 0, 74g magnezyum, 21mg kalsiyum, 10,95 mg demir, 6,36mg çinko, 0,56mg bakır, 28,60mg mangan, 66,79mikrogram iyot içerir.
    c) Aminoasitlerden; 1,51gr Leucin, 1,25gr Argitin, 0,97gr Valin, 0,92gr Methionin, 0,79gr Izoleucin, 0,77gr Phenylalanin (Fenilalanin), 0,77gr Lysin, 0,46gr Threonin, 0,41gr Histidin, 0,36gr Tryptophan (Triptofan)
    d) Ayrıca 6,5gr Ham protein, 25,3gr ham yağ, 49,4gr karbonhidrat, 10 enzimi

    Araştırmalar: Genellikle ABD'de yapılan bir düzine araştırma sonunda pirincin dışındaki ince gümüş zarın (Alöron tabakası) sayısız mineral, aminoasit ve vitamin türevleri içerdiği anlaşılmış ve bundan istifade edilme yoluna gidilmiştir. (Nhk.10.98.43 ve 11.98.59)

    Tesir şekli: İltihapları önleyici, yaraları iyileştirici, tonik (vücudu kuvvet-lendirici), vitamin, mineral ve aminoasit yetersizliğini önleyici özelliğe sahiptir.

    Kullanılması:
    a) Araştırmalara göre gümüşsü pirinç zarından (Alöron tabakası) elde edilen ilaçlar vitamin, mineral ve aminoasit yetersizliği ve serbest radikallere karşı kullanılır.
    b) Halk arasında gümüşsü zardan (Alöron tabakası) elde edilen natürel ilaç yorgunluk, dermansızlık, halsizlik, genel sağlık zafiyeti, eklemlerin iltihaplanması ve aşınması, ara dokuların gevşemesi ve sarkması, böbrek taşları, kolesterol, kalp zafiyeti, kanserli urlar ve şeker has-talığına karşı kullanılır.
    c) Pirinç yendiğinde özellikle sütlaç şeklinde mide ve bağırsakları kuv-vetlendirir, idrar atımını artırır. Pirinç nişastası özellikle ilaç sanayinde ana katkı maddesi olarak ve kozmetikte pudra yapımında kullanılır. Pirinçler içinde en kaliteli olanı ve yüksek oranda vitaminler, mineraller ve aminoasitler içeren tür natürel pirinçtir. Bu nedenle mümkünse natürel pirinç yenmelidir.

    Açıklama: Proteinler takriben 10.000'den fazla olduğu tespit edilmiştir ve bu proteinler çeşitli büyüklüklerde olabilir ve bazen 50-100 veya 200.000 aminoasit bir protein oluşturur. Proteinlerin oluşmasını sağlayan 22 çeşit aminoasit olup bu aminoasitler çeşitli şekillerde birbirleri ile birleşerek (bağlanarak) proteinleri oluştururlar. Proteinler insanın vücudunda çok çeşitli görevler görür, bazen hormon, bazen enzim, bazen de kemik, kas, tırnak, saç ve deride ana yapı maddesi olarak bulunur. Bir kişi günde 800litre hava alır ve bunun büyük bir kısmını oluşturan oksijen besin maddelerini yakarak enerjiye dönüştürür. Enerji meydana gelirken artık madde olarak serbest radikaller ortaya çıkar ve bu serbest radikaller sağlık için oldukça zararlıdır. Hücre merkezindeki nükleik asidin yapısını bozarak kanserli urların oluşmasına neden olur. Pirincin birleşimindeki enzimler, oryzanol, vitaminler ve mineraller serbest radikalleri zararsız halle getirir. Gökçek İksir ve Gökçek Tonik etki bakımından pirinçten daha etkilidirler.

    Yan tesirleri: Bilinen bir yan tesiri yoktur.

    .................................................. ..................


    SİYAH PİRİNÇ
    Yabani Pirinç Nedir? 6 Faydası, Nasıl Tüketilir(1 oy, ortalama: 5,00 / 5)

    Vegan ve Glutensiz Protein Deposu: Yabani Pirinç
    Doğanın sizlere sunduğu tahılları tek tek değerlendirmelisiniz. Dünyanın çeşitli bölgelerinde yetişen birbirinden farklı ve yararlı tahıllar, pek çok şekilde mutfaklarda yerini alıyor. Şimdi sizlere öyle bir besinden bahsedeceğiz ki; gördüğünüzde çok şaşıracaksınız. Siyah rengiyle dikkat çeken, diyetisyenlerin gündemlerinden düşmeyen yabani siyah pirinç eşsiz faydalarıyla evinize konuk olmak istiyor. Kuzey Amerikalılar tarafından binlerce yıldır kullanılan yabani pirinç, bakın hangi tariflerle ve ne gibi faydalarla insan sağlığı için öneriliyor? Hep birlikte yabani pirinç hakkında merak edilen soruların yanıtlarına göz atalım!

    Yabani Pirinç Nedir?
    • Yabani pirinç, tam tahıllı gıdalar arasında yer alır ve sağlık için faydalarıyla kendinden sıkça söz ettirir.
    • İsmi pirinç olan bu tahıl, tam manasıyla pirinç değildir. Pirinç şekline benzer bir görünümü olduğu için bu isimle tanıtılmıştır.
    • Yabani pirinç suda yetişmektedir. Fakat yetiştiği su türü, dere ve göl kenarı bazen de bataklık kenarıdır.
    • Yabani pirinç 4 farklı şekilde hasat edilmektedir. Dünyanın farklı noktalarında 4 türü de toplanır ve tüketilir.
    • Bu pirinç yerli Amerika halkı tarafından asırlardır yetiştirilmektedir. Sık sık Kuzey Amerika yemeklerinde kullanılan yabani siyah pirinç, fındık aroması tadına benzer bir tada sahiptir.
    • Yetişme döneminde uzun bir kamış üzerinde büyüyen siyah yabani pirinç, yaz bitiminden sonbahar başına doğru olgunlaşır.
    • Vegan beslenmeye uygun bir tahıl olan yabani pirinç, besin değerinin yüksek olmasından dolayı sağlıklı beslenme programlarında yerini almıştır.

    Besin Değeri Yüksek Yabani Pirincin 6 Harika Faydası

    1) Gluten İçermez
    • Yabani pirinçte gluten yoktur. Bu nedenle glutensiz beslenme düzenine uygundur.
    • Eğer glutene karşı bir alerjiniz varsa, yabani pirinç ile sağlıklı tarifler hazırlayarak sağlığınıza dikkat edebilirsiniz.
    2) Yüksek Protein Deposu
    • Yabani pirinçte yüksek oranda protein vardır. Protein ihtiyacınızı karşılamak için yabani pirinçle tarifler hazırlayabilirsiniz.
    • Aynı zamanda bu besinin kalorisi de düşük olduğu için protein alırken kilo almazsınız.
    3) Damar Tıkanıklığını Önler
    • Yabani pirinç tam tahıllı bir ürün olduğu için, kan akışını dengelemektedir.
    • Damar hastalıklarını ve kalp rahatsızlıklarını önlemek için yabani pirinç tüketebilirsiniz. Bu besin sayesinde uzun ömürlü bir hayat sürebilirsiniz.
    4) Güçlü Antioksidan Kaynağıdır
    • Pirinçler üzerine yapılan gıda araştırmaları, yabani pirinç üzerine yoğunlaşmıştır. Siyah yabani pirinç içeriği incelendiğinde, antioksidan maddelerin daha yoğun olduğu gözlemlenmiştir.
    • Antioksidan maddeler kansere karşı koruyucu bir duvar oluşturur. Yabani pirinç de bu duvarı ören taşlardan biridir.
    5) Tokluk Hissi Oluşturur
    • Yabani pirinçte bulunan diyet lifleri, uzun süre tokluk hissi vermektedir. Bu pirinç sayesinde kan şekeri dengelendiği için açlık hissedilmez.
    • Özellikle de vegan diyetlerinde yer alan yabani pirinç, zayıflama konusunda oldukça başarılı sonuçlar verir.
    6) Bağırsakları Çalıştırır ve Temizler
    • Yabani pirinç bağırsakları rahatlatan bir besindir. Özellikle de kabızlık sorunu yaşayanların haftada 2 defa tüketmesi tavsiye edilir.
    • Bağırsaklardaki parazitleri temizleyen yabani pirinç, sindirim sorunlarına da çare olmaktadır.
    Yabani Pirinç Kalori ve Besin Değerleri
    Beslenme düzenini belirli bir kalori dengesi çerçevesinde kuranlar için yabani pirinç kalori ve besin değeri tablosunu inceledik. Daha ölçülü beslenmek için bu listeyi inceleyebilirsiniz.
    • 1 yemek kaşığı yabani pirinç: 27 kalori
    • 1 fincan yabani pirinç: 267 kalori
    • 1 su bardağı yabani pirinç: 480 kalori
    Yaklaşık 1 su bardağı yabani pirinç tükettiğinizde, vücudunuza alacağınız vitamin ve mineraller ise şöyle olmaktadır:
    • 101.88 gram Karbonhidrat
    • 14.94 gram Protein
    • 4.5 gram Yağ
    • 5.94 gram Lif

    Pirinç Kaç Kalori? Pilavı, Çorbası, Lapası, Salatası

    Yabani Pirinç Nasıl Pişirilir?
    • Yabani pirinç, beyaz pirinç ile kıyaslandığında daha güçlü bir yapıya sahiptir. Kısa sürede pişirilmesi önerilmez.
    • Yabani pirinç tüketmeden bir gece önce suda bekletmeniz tavsiye edilir. Bunun için 1 su bardağı kadar yabani pirinç 3 bardak suda bekletilmelidir.
    • Tüketileceği tariflerde tam kıvamında pişmesi için ortalama 45 dakika kadar kaynaması gereklidir.
    • Haşlayarak ya da çeşitli tarifleri deneyerek yabani pirinç tüketilmesi önerilir.

    Yabani Pirinç Nasıl Tüketilir?
    • Yabani pirinç kullanarak birbirinden lezzetli yemekler hazırlayabilirsiniz.
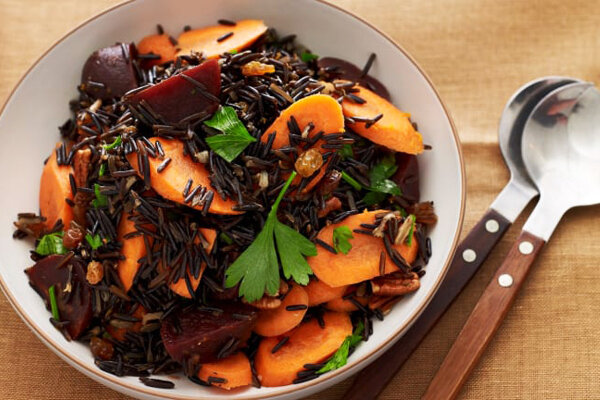
    • Eğer yabani pirinç ile ne yapacağınıza henüz karar veremediyseniz, et yemeklerinin yanına servis edebileceğiniz yabani pirinç pilavı yapabilirsiniz.
    • Pirinç ile hazırlanan salatalara da kendine has rengiyle ufak bir dokunuş katan yabani pirinç, çeşitli çorbalara da eklenebilir.
    • Fındık aroması tadına sahip olan yabani pirinç, tek başına haşlanıp balık ve et yemeklerinin yanına garnitür olarak sunulabilir.

    Esmer Pirinç Topları

    Yabani Pirinç Nerede Satılır? Fiyatı Ne Kadar?
    • Siyah pirinç adıyla marketlerde bulabileceğiniz yabani pirinç, internet üzerinden de satılmaktadır.
    • Güvenli paketlerle 500 gram ve 1 kilo ölçülerde tüketiciye sunulan yabani pirinç, ülkemizde pek çok noktada bulunmaktadır.
    • Yabani pirinç fiyat bilgisi, markalara göre bir miktar farklılık gösterebilir.

    Doğal Temizlik: Pirinç Sirkesi Faydaları, Kullanımı

    Kaynak: www.exportersindia.com

    Pirinç ile hazırlanan tarifler için sitemizi ziyaret edebilirsiniz.

    Kaynak: jamiegeller.com

  • #2
    Pigmentli Pirinç Tahılının Genetik Temeli ve Besinsel Faydaları

    Edwige Gaby Nkouaya Mbanjo , 1, 2 Tobias Kretzschmar , 3 Huw Jones , 4 Nelzo Ereful , 4 Christopher Blanchard , 5 Lesley Ann Boyd , 4 ve Nese Sreenivasulu 1, *
    Yazar bilgileri Madde notları Telif Hakkı ve Lisans bilgileri Uyarı
    Şuraya git: Öz


    Biyoaktif bileşiklerin ve mikro besinlerin modülasyonu yoluyla pirinç tanelerinin besin kalitesinin iyileştirilmesi, temel olarak pilav gıda olarak pilavlara bağımlı toplumlarda beslenme güvenliğini ele almak için etkili bir araç oluşturmaktadır. Beyaz pirinç, Asya ve Afrika popülasyonlarının kalorifik alımına önemli bir katkı sağlar, ancak besin kalitesi pigmentli (siyah, mor, kırmızı turuncu veya kahverengi) varyantlara kıyasla zayıftır. Bu renk varyasyonlarından sorumlu bileşikler, besin değeri olduğu bilinen flavonoid antosiyanin ve proantosiyanididir. Genom dizilemesinin altında yatan teknolojilerde hızlı ilerleme, gen ifadesinin analizi ve küresel 'omics verilerinin elde edilmesi, tahıl pigmentasyonunun genetiği, pigmentli pirincin besin değerini ve verimliliğini artırmak için moleküler ıslah uygulamak için yeni fırsatlar yaratmıştır. Bu derleme, pigmentli pirinç tanesinin besin değeri ve sağlık yararları hakkında bir güncelleme sağlar ve hem yerli hem de modern bilgilerden yararlanırken, pigmentasyonun genetik temelini deşifre etmek için alınan mevcut yaklaşımları da açıklar.

    Anahtar Kelimeler: pigmentli pirinç tanesi, beslenme, flavonoidler, metabolitler, genetik

    Giriş
    Pirinç, dünya nüfusunun yarısından fazlasında temel gıdadır ( World Rice Production, 2019 ). 2050 1 yılına kadar 9,7 milyara ulaşacağı tahmin edilen büyüyen nüfus için gelecekteki pirinç arz talebini karşılamak, gıda ve beslenme güvenliğinin sağlanmasında merkezi bir öneme sahiptir . Pirinç, Asya nüfusu için gıda kaynağı olarak kritik önemine ek olarak, çeşitli sosyal, kültürel, ekonomik ve dini faaliyetlerde de bulunmaktadır ( Ahuja ve diğerleri, 2007 ; Hedge ve diğerleri, 2013 ; Sathya, 2013 ) . Sahra altı Afrika'da, pirinç tüketiminin 2026'nın sonundaki mevcut 27-28 Mt seviyesinden 2026 sonuna kadar 36 Mt'a çıkacağı tahmin edilmektedir ( Terungwa ve Yuguda, 2014 ;Nigatu ve diğerleri, 2017 ), manyok, yam, mısır, darı ve sorgum için mevcut talebin bir kısmını değiştirmiştir.

    Pirinç tanesinde bulunan besin maddelerinin çoğu, dış aleurone tabakasında ve embriyoda birikir, endosperm esas olarak nişastadan oluşur. Dehulling ve öğütme işlemi çoğu mikro besinleri, yağ asitlerini, antioksidanları ve lifi atar. Sonuç olarak, diyetler çeşitli beslenme faktörleri için beyaz pirinç risk eksikliklerine aşırı bağımlıdır ( Verma ve Shukla, 2011 ; Sharma ve diğerleri, 2013 ; Saneei ve diğerleri, 2016 ; Sarma ve diğerleri, 2018 ). Pirinç yetiştiriciliğinin odak noktası, tahılın büyüklüğünü, şeklini ve amiloz içeriğini iyileştirmek için biraz önem verilmesine rağmen, mahsulün verimliliğini arttırmaya odaklanmıştır ( Breseghello, 2013 ; Rao ve ark., 2014)). Bazı geleneksel topraklar tarafından üretilen tahılın beslenme kalitesinin, büyük ölçüde biyoaktif bileşiklerin daha etkili birikmesi nedeniyle, geleneksel, modern pirinç çeşitleri tarafından üretilen tahıldan daha yüksek olduğu gösterilmiştir ( Bhat ve Riar, 2015 ; Berni et al ., 2018 ). Sağlığı geliştiren gıda ürünlerine yönelik artan tüketici ilgisi, daha fazla besin değeri olan pirinç için önemli bir pazar yaratarak, pirincin temel olduğu çok sayıda insan için sağlık yararları yaratırken, aynı zamanda üreticiler için ekonomik faydalar ( Terungwa ve Yuguda, 2014). Sonuç olarak, bir dizi büyük pirinç araştırma programının odağı, tahılların glisemik indeksinde bir azalma ile birlikte, geliştirilmiş bir mikro besin ve antioksidan içeriği kapsayan beslenme kalitesi konusuna yönelmektedir.

    Bu derleme, pigmentli pirinç tanesinin hem yerli bilgiye hem de mevcut araştırmalara dayanarak beslenme ve sağlık özelliklerini araştırmakta ve pigmentli pirinç tanesinin besinsel gıda güvenliğini ele alma potansiyelini tartışmaktadır. Buna ek olarak, tahıl pigmentasyonunun genetik temelini araştırır ve 'omics teknolojilerinin, yetersiz beslenmenin çifte yükü sorununu çözmek için yapabileceği potansiyel katkıyı önerir.

    Doğrulanmış Bilimsel Kanıtlarla Tamamlanan Yerli Bilgi, Pigmentli Pirinç Tahılının Beslenme ve Sağlığı İyileştirme Potansiyeli Hakkında Bilgi Verir

    Yerli diyetler uzun bir süre boyunca yerel toplulukların ihtiyaçlarını karşılamak için geliştirilmiştir ve bunlarla ilişkili bilgi, pirincin modern diyetteki yeri hakkındaki tartışmayı bilgilendirmek için bir kaynak olarak görülmelidir ( Berni ve ark., 2018 ; Khatri, 2018 ). Bu tür arazilerin hem insan beslenmesi hem de sağlık bağlamındaki değeri ( Rahman ve diğerleri, 2006 ; Chunta ve diğerleri, 2014 ) pigmentli tahıl tüketmenin kanıtlanmış avantajları ile örneklendirilebilir ( Şekil 1 ; Rahman ve diğerleri, 2006) ; Umadevi ve diğerleri, 2012 ; Sathya, 2013 ). Özellikle, pigmentli pirinç, anti-enflamatuar ve diüretik aktivite ile ilişkilendirilmiştir (Umadevi ve diğerleri, 2012 ). Yerli yerli bilgiye dayanarak, ishal, kusma, ateş, kanama, göğüs ağrısı, yaralar, yanıklar ve gastrointestinal problemlerin tedavisi için ve ayrıca çeşitli karaciğer ve böbrek rahatsızlıklarının giderilmesi için önerilmiştir ( Hedge et al., 2013 ; Sathya, 2013 ). Bazı pigmentli pirinç çeşitleri hala cilt hastalıklarını, kan basıncını, ateşi, felci, romatizmayı ve lökorrayı tedavi etmek için ve hatta genel bir sağlık tonikinin temeli olarak kullanılmaktadır ( Ahuja ve ark., 2007 ). Filipinler'de tiamin eksikliğini tedavi etmek için pirinç kepeği türetilmiş “tiki tiki” kullanılmıştır ( Umadevi et al., 2012). Hindistan'da, pigmentli pirinç landraces tanesi emziren annelere sunulmaktadır ve hem sarılık tedavisi hem de felç tedavisi için kullanılır. Pirinç çeşidi “Laicha”, isimsiz bir cilt hastalığını önleme yeteneği nedeniyle adını almıştır ( Das ve Oudhia, 2000 ). 2.000 yıldan fazla bir süredir, Güney Hindistan'da yeryüzünde yer alan “Kavuni” tahılının antioksidan, anti-artritik ve anti-diyabetik özellikler sergilediği bildirildi ve gastrit ve peptik ülserleri iyileştirmek ve iyileştirmek için kullanıldı. kan dolaşımı ( Valarmathi ve ark., 2014 ; Hemamalini ve ark., 2018 ).
    Resim, resim vb. İçeren harici bir dosya. Nesne adı fgene-11-00229-g001.jpg
    ŞEKİL 1
    Pirinçte tane pigmentasyonu için genetik varyasyon. Sahip taneler (a, b) , beyaz, (c, d) , kahverengi, (e-g) mor, (i, j) koyu mor renkli veya siyah, (k-N) kırmızı ve (o, p) karışık renkli perikarp. Tahıl pigmentasyonunun genetik yolunu anlamak için çeşitli genomik yaklaşımların uygulanması ana hatlarıyla belirtilmiştir.

    Bilimsel temelli bir dizi çalışma, pigmentli pirinç tanesinin anti-oksidan, anti-diyabetik, anti-hiperlipidemik ve anti-kanser aktivitesine sahip olduğu hipotezini destekleyen kanıtlar sağlamıştır ( Baek ve ark., 2015 ; Boue ve ark., 2016 ) aşağıda incelenmiştir.

    Antioksidan Aktivite
    Diyet antioksidanları, zararlı reaktif oksijen türlerinin birikimi ile mücadele etmek ve vücudun redoks durumunu dengelemek için etkili bir araçtır ( Krishnanunni ve ark., 2014 ). Pigmentli pirinç tanesinden elde edilen ekstraktların analizi, fenolik bileşiklerin tokoferol ve antosiyaninin reaktif oksijen türlerinin etkili nötrleştiricileri olduğunu göstermiştir ( Zhang ve diğerleri, 2015 ; Ghasemzadeh ve diğerleri, 2018 ), hayvan testleri bu bileşiklerin biyoyararlanabileceğini kanıtlamıştır. ( Tantipaiboonwong ve diğerleri, 2017 ). Birçok çalışma, pigmentli pirinç tanelerinin (en belirgin olarak siyah pirinç tarafından) sergilenen yükseltilmiş anti-oksidasyon aktivitesinin, enflamatuar yanıtı hafifletmek için kullanılabileceğini göstermiştir ( Chakuton ve ark., 2012; Petroni ve ark., 2017 ).

    Diyabetik Olmayan Aktivite

    Bazı geleneksel pigmentli pirinç çeşitlerinin tanelerinin glikoz homeostazını desteklemede etkili olduğu kanıtlanmıştır ve bu nedenle diyabetes mellitusun yönetimi için yararlıdır ( Hemamalini ve ark., 2018 ). Kan şekeri seviyesini yükselten beyaz pirinç tanesi tüketiminin aksine, pigmentli tahıl tüketmek kan şekeri düzeylerini düşürebilir. Pigmentli pirinç tanesi ve kepek ekstraktlarının, endojen a-amilaz ve a-glukosidaz aktivitesini etkili bir şekilde inhibe ettiği, böylece kullanılacak bağırsakta nişasta kaynağı olarak işlev gören ince bağırsakta nişastanın glikoza dönüşümünü inhibe ettiği gösterilmiştir. kolondaki bağırsak mikrobiyotası ( Boue ve ark., 2016 ; Chiou ve ark., 2018). Hem kırmızı hem de mor taneden elde edilen ekstraktların a-glukosidaz aktivitesini inhibe ettiği bildirilirken, sadece ilkinin α-amilaz aktivitesini inhibe etmede de etkili olduğu bildirilmiştir ( Valarmathi ve ark., 2014 ; Boue ve ark., 2016 ). Bütün siyah pirinç tanesinde bulunan antosiyaninler, β-glukosidazın güçlü bir inhibitörü olarak işlev gördü, böylece karbonhidratların emilimini geciktirdi ( Chandramouli ve ark. 2018 ). Siyah pirinç kepeği ekstraktlarının da pankreas beta hücrelerinin onarımını ve rejenerasyonunu indüklediği gösterilmiştir ( Wahyuni ​​vd., 2016 ). Genel olarak, pigmentli pirincin anti-diyabetik etkileri antosiyanin, proantosiyanidin, E vitamini, γ-orizanol ve çeşitli flavonoidlerin sinerjistik bir etkisinden kaynaklanıyor gibi görünmektedir (Tantipaiboonwong ve diğerleri, 2017 ). Siyah pirinç özleri, kan şekeri düzeylerini kırmızı pirinç özlerinden daha hızlı bir şekilde düşürdü; bu, insülin duyarlılığını, glikoz alımını ve adiponektin sekresyonunu aktive eden bir bileşik olan siyanidin 3-glukozit varlığına atfedilen bir fark ( Matsukawa ve ark., 2016 ; Tantipaiboonwong ve diğerleri, 2017 ). Bununla birlikte, siyah pirincin çoğu amiloz içeriğinde düşüktür ve öğütüldükten sonra aleurone içinde biriken antosiyaninlerin çoğu kaybolur, bu nedenle öğütülmüş pirinç şeklinde tüketildiğinde düşük GI özelliğine sahip olması gerekmez ( Kang ve diğerleri, 2011) ).

    Kanser Karşıtı Aktivite

    Önemli miktarda kanıt, pigmentli pirinç tüketiminin belirli kanserlere karşı koruyucu bir etkiye sahip olduğunu göstermektedir. Ghasemzadeh ve diğ. (2018) , hem siyah hem de kırmızı pirinç özlerinin, meme kanseri hücrelerinin çoğalmasını engellediğini göstermiştir. Mor pirinç kepeği ekstraktlarında bulunan fenolik asitlerin, flavonoidlerin, antosiyaninlerin ve fitik asidin anti-mutajenler ve potansiyel kanser baskılayıcıları olarak işlev gördüğü gösterilmiştir. Bu fitokimyasalların, ya karsinojenetik sitokromlar P450 CYP1A1 ve CYP1B1'i bloke ederek ve / veya serbest radikalleri etkili bir şekilde temizleyerek etki ettiği öne sürülmüştür ( Insuan ve ark., 2017). Pigmentli tanelerin biyoaktif bileşikleri, kanser hücrelerinin canlılığını azaltabilir ve hatta apoptozlarını indükleyebilir. Bu etkinin mekanik temelinin, her pirinç çeşidinde mevcut olan biyoaktif bileşiklerin spektrumundaki farklılıkları yansıtan, çeşitliliğe bağlı olduğu bulunmuştur ( Baek ve diğerleri, 2015 ). Mor pirincin yüksek antosiyanin içeriği, insan hepatoselüler karsinom hücrelerinin büyümesi üzerinde engelleyici bir etki ile ilişkilendirilmiştir ( Banjerdpongchai ve ark., 2013 ), mor pirinç kepeği özleri aflatoksin B1 ile başlatılan hepatokarsinogenezin ilk aşamasını bloke edebilmiştir. anahtar metabolik aktive edici enzimleri inhibe ederek ( Suwannakul ve diğerleri, 2015). Kırmızı pirinç özlerinin , kanser hücrelerinin invazivliğini doza bağlı bir şekilde sınırladığı gösterilmiştir ( Pintha ve ark., 2014 ). Fitosteroller 24-metilendisikloartanol, β-sitosterol, gramisterol, kampesterol, stigmasterol, sikloeukalenol, 24-metilen-ergosta-5-en-3β-ol ve 24-metilen-ergosta-7-en-3β-ol siyah pirinç kepeği ekstraktlarında bulunur, ayrıca murin lösemik hücrelerin proliferasyonunu kısıtlayan ajanlar olarak etkili oldukları bildirilmiştir ( Suttiarporn ve ark., 2015 ). Sonuç olarak, Luo ve ark. (2014) meme kanseri metastazını önlemek için pigmentli pirincin insan diyetine dahil edilmesine dayanmaktadır.

    Şuraya git: Pigmentli Pirinç Tanesinin Biyokimyasal Özellikleri

    Pigmentli Pirinç Tahılında Fitosteroller, Karotenoidler, Vitaminler ve Mikro Besinler


    fitosteroller


    Pirinç taneleri çok çeşitli ikincil metabolitler içerir ( Tablo 1 ). Pigmentli tahılın pigmentsiz tahıldan daha yüksek bir p -orizanol seviyesi biriktiği görülmektedir ( Chakuton ve ark., 2012 ). Tahıl, çeşitli fitosteril ferulatların ( Chakuton ve ark., 2012 ), özellikle 24-metilenikloartanil ferulat, sikloartenil ferulat, kampesteril ferulat ve β-sitosteril ferulatın ( Zubair et ) bir karışımını içeren aktif anti-oksidan γ-orizanolü biriktirir. al., 2012 ; Pereira-Caro ve diğerleri, 2013 ). Fitosterollerin en önemli besinsel yararı, hem kolesterol emilimini inhibe etme hem de kanın istenmeyen lipoprotein içeriğini kontrol etme kabiliyetleridir (Jesch ve Carr, 2017 ). Ticari pirinç çeşitlerinde tespit edilen baskın fiztosteroller, β-sitosteroldür, bunu kampesterol, Δ 5- avenasterol ve stigmasteroldür ( Zubair ve diğerleri, 2012 ). Siyah pirinç çeşidinin “Riceberry” kepeği ayrıca üç ek sterol, yani 24-metilen-ergosta-5-en-3β-ol, 24-metilen-ergosta-7-en-3β-ol ve fucosterol ( Suttiarporn et) içerir. al., 2015 ). TABLO 1


    Pigmentli pirinçte tanımlanan biyoaktif ve besin bileşikleri.
    Bileşik PubChem CID Bileşik sınıf Şekil 2 a Referanslar
    Siyanin 3-glukozit 197081 antosiyanin ✓ Pereira-Caro ve ark., 2013 ;
    Peonidin-3-glukozit 443654 antosiyanin ✓ Zhang ve diğ., 2015 ;
    siyanidin 128861 antosiyanin Tantipaiboonwong ve diğerleri, 2017 ;
    Siyanidin-3,5-diglukozit 44256718 antosiyanin ✓ Shao ve diğ., 2018
    Siyanidin-3- O - (6 ”- O - p- koumaroil) glukozit antosiyanin ✓
    Pelargonidin-3- O -glukozit 443648 antosiyanin
    Peonidin-3- O - (6 ”- O - p- koumaroil) glukozit antosiyanin ✓
    Siyanidin -3- O - arabidosid antosiyanin ✓

    flavon 10680 flavon
    Luteolin-6 / 8- C -pentosid-6 / 8- C- heksosid (2 izomer) flavon Pereira-Caro ve ark., 2013 ;
    Apigenin-6 / 8- C -pentosid-8 / 6- C- heksosid (üç izomer) Flavon glikozit Kim ve diğerleri, 2014 ;
    Apigenin-6- C - glukozil -8- C - arabinosit flavon Ghasemzadeh ve ark., 2018 ;
    Tricin- O- ramnosid- O- heksosid flavon Poulev ve diğerleri, 2019
    Trisin 5281702 flavon ✓
    Chrysoeriol 5280666 flavon ✓
    luteolin 5280445 flavon ✓
    Apigenin 5280443 flavon ✓

    Kafeik asit 689043 Hidrosinnamik asit ✓ Gunaratne ve diğerleri, 2013 ;
    p-Kumarik asit 637542 Hidrosinnamik asit ✓ Zhang ve diğ., 2015 ;
    Ferulik asit 445858 Hidrosinnamik asit ✓ Irakli ve ark., 2016 ;
    Sinapik asit 637775 Hidrosinnamik asit ✓ Tantipaiboonwong ve diğerleri, 2017 ;
    İzoferulik asit 736186 Hidrosinnamik asit Chiou ve ark., 2018 ;
    Klorojenik asit 1794427 Hidrosinnamik asit Ghasemzadeh ve ark., 2018 ; Shao ve diğ., 2018

    2,5-Dihidroksibenzoik asit 3469 Hidroksibenzoik asit ✓ Kim ve diğerleri, 2014 ;
    p- Hidroksibenzoik asit 135 Hidroksibenzoik asit ✓ Valarmathi ve ark., 2014 ;
    gallik asit 370 Hidroksibenzoik asit ✓ Suwannakul et al., 2015;
    Vanillic acid 8468 Hydroxybenzoic acid ✓ Huang and Lai, 2016;
    Syringic acid 10742 Hydroxybenzoic acid ✓ Irakli et al., 2016;
    Protocatechuic acid 72 Hydroxybenzoic acid ✓ Tantipaiboonwong et al., 2017;
    Salicylic acid 338 Hydroxybenzoic acid ✓ Ghasemzadeh et al., 2018;
    β-Resorcylic acid 1491 Hydroxybenzoic acid Shao et al., 2018

    Protocatechualdehyde 8768 Phenolic aldehyde Huang and Lai, 2016
    8-5′-Coupled diferulic acid Phenolic dehydrodimer Zhang et al., 2015
    5-5′-Coupled diferulic acid Phenolic dehydrodimer
    8-8′-Coupled diferulic acid benzofuran form Phenolic dehydrodimer

    Proanthocyanidin dimer Proanthocyanin ✓ Gunaratne et al., 2013
    Proanthocyanidin trimer Proanthocyanin ✓

    Catechin 73160 Flavanonol ✓ Tantipaiboonwong et al., 2017;
    Epicatechin 72276 Flavanonol ✓ Ghasemzadeh et al., 2018

    Quercetin 5280343 Flavonol Pereira-Caro et al., 2013;
    Quercetin-3-O-glucoside Flavonol Valarmathi et al., 2014;
    Quercetin-3-O-rutinoside Flavonol Chiou et al., 2018;
    Isorhamnetin-3-O-glucoside 5318645 Flavonol Ghasemzadeh et al., 2018;
    Myricetin 5281672 Flavonol Poulev et al., 2019
    Rutin 5280805 Flavonol
    Kaempferol 5280863 Flavonol
    Kaempferide 5281666 Flavonol
    Naringenin 932 Flavanone ✓ Chiou et al., 2018
    Cycloartenol ferulate 134695320 γ-Oryzanol Chakuton et al., 2012;
    24-Methylenecycloartenol ferulate 9920169 γ-Oryzanol Gunaratne et al., 2013;
    Campesteryl ferulate 15056832 γ-Oryzanol Pereira-Caro et al., 2013
    β-Sitosteryl ferulate 9938436 γ-Oryzanol
    Δ7-Campesteryl ferulate γ-Oryzanol
    Campestanyl ferulate 13786591 γ-Oryzanol
    Sitostanyl ferulate 11227138 γ-Oryzanol

    Phytic acid 890 Phytic acid Chakuton et al., 2012; Insuan et al., 2017

    Tocotrienols (α-, β-, γ-, δ-forms) 9929901 Vitamin E Zubair et al., 2012;
    Tocopherols (α-, β-, γ-, δ-forms) 14986 Vitamin E Gunaratne et al., 2013; Irakli et al., 2016

    Riboflavin 493570 Vitamin B2 Valarmathi et al., 2014

    Nicotinic acid 938 Vitamin B3 Kim et al., 2014

    Lutein 5281243 Carotenoid Pereira-Caro et al., 2013;
    Zeaxanthin 5280899 Carotenoid Valarmathi et al., 2014;
    β-Carotene 5280489 Carotenoid Irakli et al., 2016;
    Lycopene 446925 Carotenoid Melini and Acquistucci, 2017
    β-Carotene-4,4′-dione Carotenoid
    all-trans-3,3’,4,4’-Tetrahydrospirilloxanthin 5366411 Carotenoid
    10′-Apo-β-carotenoic acid Carotenoid
    24-Methylene-ergosta-5-en-3β-ol Phytosterol Suttiarporn et al., 2015
    24-Methylene-ergosta-7-en-3β-ol Phytosterol
    Fucosterol 5281326 Phytosterol
    Gramisterol 5283640 Phytosterol
    Campesterol 173183 Phytosterol
    Stigmasterol 5280794 Phytosterol
    β-Sitosterol 222284 Phytosterol

    Cycloeucalenol 101690 Triterpenoid Suttiarporn et al., 2015
    Lupenone 92158 Triterpenoid
    Lupeol 259846 Triterpenoid
    24-Methylenecycloartanol 94204 Triterpenoid
    LysoPC 14:0 460604 Phospholipid Kim et al., 2014
    LysoPC 18:2 11005824 Phospholipid
    LysoPC 16:0 460602 Phospholipid
    LysoPC 18:1 53480465 Phospholipid
    Histidine 6274 Essential amino acid Kim et al., 2014;
    Threonine 6288 Essential amino acid Thomas et al., 2015
    Valine 6287 Essential amino acid
    Methionine 6137 Essential amino acid
    Lysine 5962 Essential amino acid
    Isoleucine 6306 Essential amino acid
    Leucine 6106 Essential amino acid
    Phenylalanine 6140 Essential amino acid ✓

    l-Aspartate 5460294 Non-essential amino acid Kim et al., 2014;
    Serine 5951 Non-essential amino acid Valarmathi et al., 2014;
    Glutamine 5961 Non-essential amino acid Thomas et al., 2015
    Glycine 750 Non-essential amino acid
    Arginine 6322 Non-essential amino acid
    Alanine 602 Non-essential amino acid
    Proline 614 Non-essential amino acid
    Tyrosine 6057 Non-essential amino acid
    α-Aminobutyric acid (AABA) 6657 Non-essential amino acid
    Potassium (K) 5462222 Mineral Valarmathi et al., 2014;
    Calcium (Ca) 5460341 Mineral Thomas et al., 2015;
    Magnesium (Mg) 5462224 Mineral Raghuvanshi et al., 2017;
    Sodium (Na) 5360545 Mineral Shozib et al., 2017;
    Chromium (Cr) 23976 Mineral Hurtada et al., 2018
    Iron (Fe) 23925 Mineral
    Manganese (Mn) 23930 Mineral
    Zinc (Zn) 23994 Mineral
    Copper (Cu) 23978 Mineral
    Phosphorus (P) 5462309 Mineral

    Caproic acid 8892 Fatty acid Valarmathi et al., 2014;
    Caprylic acid 379 Fatty acid Thomas et al., 2015
    Capric acid 2969 Fatty acid
    Lauric acid 3893 Fatty acid
    Tridecanoic acid 12530 Fatty acid
    Myristic acid 11005 Fatty acid
    Pentadecanoic acid 13849 Fatty acid
    Palmitic acid 985 Fatty acid
    Stearic acid 5281 Fatty acid
    Arachidic acid 10467 Fatty acid
    9-Octadecanoic acid 965 Fatty acid
    Undecanoic acid 8180 Fatty acid
    Oleanolic acid 10494

    Myristoleic acid 5281119 Mono-unsaturated fatty acid Valarmathi et al., 2014;
    cis-10-Pentadecenoic acid 5312411 Mono-unsaturated fatty acid Thomas et al., 2015
    Oleic acid 445639 Mono-unsaturated fatty acid
    cis-Vaccenic acid 5282761 Mono-unsaturated fatty acid
    Erucic acid 5281116 Mono-unsaturated fatty acid

    Hexadecadienoic acid Polyunsaturated fatty acid Valarmathi et al., 2014;
    Hexadecatrienoic acid 6506600 Polyunsaturated fatty acid Thomas et al., 2015
    Linoleic acid 5280450 Polyunsaturated fatty acid
    Octadecatetraenoic acid 11778225 Polyunsaturated fatty acid
    cis-11,14,17-Eicosatrienoic acid 5312529 Polyunsaturated fatty acid
    cis-5,8,11,14-Eicosatetraenoate acid Polyunsaturated fatty acid
    Eicosatetraenoic acid 21863049 Polyunsaturated fatty acid
    Pinellic acid 9858729 Oxylipin Kim et al., 2014
    Succinic acid 1110 Carboxylic acid
    Maleic acid 444266 Carboxylic acid
    Malonik asit 867 Karboksilik asit
    Sitrik asit 311 Karboksilik asit
    Sinnamik asit 444539 Karboksilik asit ✓
    d- Ksiloz 135191 Şeker Kim ve diğerleri, 2014 ;
    d -Fruktoz 2723872 Şeker Valarmathi ve ark., 2014
    d -Glikoz 5793 Şeker
    Maltoz 439341 Şeker
    myo -Inositol 892 Şeker
    Ayrı bir pencerede aç
    a Şekil 2'de mevcut olan bileşikler.

    Karotenoidler

    Karotenoidler başka bir besin açısından faydalı bileşik sınıfını temsil eder ( Roberts ve Dennison, 2015 ). Lutein ve zeaksantin, pirinç tarafından üretilen karotenoidlerin% 90'ından fazlasını, az miktarda bulunan karotenler, likopenler ve ca -karoten ile birlikte temsil eder ( Pereira-Caro vd., 2013 ; Melini ve Acquistucci, 2017 ). Bu bileşik sınıfının çoğu kepekte bulunur, öğütülmüş pirinçte çok az karotenoid bulunur veya hiç bulunmaz ( Petroni ve ark., 2017 ). Tahıl karotenoid içeriği genetik olarak değişken bir özelliktir ve tahıl pigmentasyonu ile güçlü bir şekilde ilişkilidir ( Ashraf ve ark., 2017 ). Kırmızı ve siyah pirinç özellikle yüksek karotenoid içeriği biriktirirken, beyaz pirinç çok az birikir (Ashraf ve diğ., 2017 ; Petroni ve ark., 2017 ).

    Vitaminler

    Pirinç tanesi hem tokoferolleri hem de tokotrienolleri içeren iyi bir E vitamini kaynağıdır ( Zubair ve ark., 2012 ). Β- ve γ-tokotrienoller pirinçte bulunan en bol formlardır ( Irakli ve ark., 2016 ). Göre Gunaratne ve diğ. (2013) , kırmızı pirinç taneleri, modern beyaz pirinç çeşitlerinin tahıllarından daha yüksek toplam tokoferol ve tokotrienol seviyelerine sahiptir. Bununla birlikte, dehulling ve öğütmenin tahılın tokoferol içeriğini güçlü bir şekilde azalttığına dikkat edin ( Zubair ve ark., 2012 ).

    Mikrobesinler

    Pirinç tanesi çinko, magnezyum, demir, bakır, potasyum, manganez ve kalsiyum gibi bazı temel mikro besinlerin izlerini içerir ( Tablo 1 ; Raghuvanshi ve diğerleri, 2017 ; Shozib ve diğerleri, 2017 ; Shao ve diğerleri, 2018 ). Mineral içeriğinde bazı genetik varyasyonlar bildirilmiştir; ancak genel olarak pigmentli pirinç tanesi beyaz tahıl pirincinden daha fazla miktarda birikir ( Shozib ve diğerleri, 2017 ). Diğer çalışmalar, pigmentli pirincin beyaz tahıldan daha yüksek seviyelerde çinko, demir ve manganez içerdiğini, ancak daha düşük bir fosfor seviyesini önerdi ( Raghuvanshi ve diğerleri, 2017 ; Hurtada ve diğerleri, 2018 ; Shao ve diğerleri, 2018). Kahverengi pirinç, önerilen günlük çinko, bakır ve demir alımının% 75'ini sağlayabilir, ancak bu beyaz pirinç için sadece% 37'ye düşer ( Hashmi ve Tianlin, 2016 ). Pigmentli Pirinç Tanesinde Flavonoid Metabolizması


    Pigmentli pirinç tanesinde bulunan başlıca flavonoidler proantosiyanidinler ve antosiyaninlerdir ( Tablo 1 ). Flavonoidlerin sentezi, fenilalanin amonyak liyaz tarafından katalizlenen bir reaksiyon olan sinnamik asit oluşturmak için fenilalaninin deaminasyonu ile başlatılır. Sinnamat 4-hidroksilaz, sinnamik asidin 4-kumarik aside oksidasyonunu katalize eder, bu da 4-koumaroil-CoA ligazının etkisiyle 4-koumaroil-CoA'ya dönüştürülür ( Cheng ve diğerleri, 2014 ). Hız sınırlama adımı, sinnamik asidin , fenolik asitler, flavanonlar, proantosiyanidinler ve antosiyanidinlerin sentezini etkileyen p -koumaroil-CoA'ya dönüştürülmesidir ( Şekil 2 ).
    Resim, resim vb. İçeren harici bir dosya. Nesne adı fgene-11-00229-g002.jpg
    ŞEKİL 2
    Pirinçte ikincil metabolizma. (A) Şikimik asit yolunun şematik bir temsili. DAHP, 3-deoksi- d -arabino-heptulosonik asit 7-fosfat; DAHPS, 3-deoksi- d -arabino-heptulosonat-7-fosfat sentaz; DHQ / SDH, 3-dehidrokinat dehidrataz / shikimate 5 dehidrojenaz; DHQS, 3-dehidrokinat sentetaz; DHS, 3-dehidrosikimik asit; SDH, shikimate dehidrojenaz; SK, shikimate kinaz; S3P, şikimik asit 3-fosfat; EPSPS, 5-enolpiruvilshikimate 3-fosfat sentaz; EPSP, 5-enolpiruvilshikimate 3-fosfat; CS, koromat sentaz; CM, chorismat mutase; PAT, prefenat aminotransferaz; ADT, arojenat dehidrataz; PDT, prefenat dehidrataz; PPY-AT, fenilpiruvat aminotransferaz ( Tzin ve Galili, 2010 ;Widhalm ve Dudareva, 2015 ; Santos-Sánchez ve diğerleri, 2019 ). (B) Benzoik asit, benzoik asit türevi bileşikler ve lignin üretimi için olası yollar. CNL, sinnamat-CoA ligazı; CHD, sinnamoil-CoA-dehidrojenaz / hidrataz; KAT1, 3-ketoasil-CoA thiolase; TE, CoA tiyoesteraz; BA2H, benzoik asit 2-hidroksilaz; BALDH, benzaldehid dehidrojenaz; AO, aldehid oksidaz; C4H, sinamat 4-hidroksilaz; 4CL, 4-kumararat: CoA ligazı; ICS, izoshorismat sentaz; CCR, sinnamoil-CoA redüktaz; CCoAOMT, caffeoyl-CoA O -metiltransferaz ; F5H, ferlat 5-hidroksilaz; CSE, caffeoyl shikimate esteraz; COMT, kafeik asit O- metiltransferaz; CAD, sinnamil alkol dehidrojenaz; LAC, lakkaz; POD, peroksidaz; p-HBD, p- hidroksibenzaldehid; HBDS, 4-hidroksibenzaldehit sentaz; HCHL, 4-hidroksisinnamoil-CoA hidrataz / liyaz; HBD, 4-hidroksibenzaldehid dehidrojenaz ( Qualley ve ark., 2012 ; Gallage ve Møller, 2015 ; Widhalm ve Dudareva, 2015 ; Liu ve ark., 2018 ). (C) Flavonoid metabolizması. PAL, fenilalanin amonyak liyaz; C4H, sinamat 4-hidroksilaz; CHS, kalkon sentetaz; CHI, kalkon izomeraz; F3H, flavon 3-hidroksilaz; DFR, dihidroflavonol 4-redüktaz; ANS, antosiyanin sentaz; ANR, antosiyanin redüktaz; GT, glukosiltransferaz; LAR, lökostosiyanidin redüktaz; MT, O- metiltransferaz; F2H, flavanon 2-hidroksilaz ( Chen ve diğerleri, 2013; Galland ve diğerleri, 2014 ). Kare noktalı oklar henüz tam olarak aydınlatılmamış adımları gösterirken, siyah oklar genetik kanıtlarla desteklenen adımları gösterir.

    Fenolik Asitler

    Beyaz tanelerle karşılaştırıldığında, pigmentli taneler daha yüksek seviyede fenolik asitler içerir ( Gunaratne ve ark., 2013 ; Zhang ve ark., 2015 ). Sinnamik asit, p- koumarik asit, ferulik asit, sinapik asit, izoferulik asit ve 2,5-dihidroksibenzoik asit dahil olmak üzere çeşitli fenolik asitlerin sentezinde bir öncü görevi görür ( Zhang ve diğerleri, 2015 ; Shao ve diğerleri, 2018 ). Beyaz pirinçte bulunan baskın fenolik asitler, p- koumarik asit ve ferulik asittir; bunlar büyük ölçüde lignin sentezi için yapı taşları olarak kullanılır ( Şekil 2 ). Özellikle siyah pirinçte aktif olan alternatif bir yolda, sinnamik asit vanilik aside ve protokateknik aside dönüştürülür (Zhang ve diğ., 2015 ; Shao ve diğerleri, 2018 ). Kırmızı pirinçte, kafeik asit küçük bir fenolik asit olarak tanımlanırken, bu bileşik kahverengi pirinçte tespit edilemez ( Gunaratne ve diğerleri, 2013 ; Zhang ve diğerleri, 2015 ; Irakli ve diğerleri, 2016 ; Shao ve diğ. , 2018 ). Tanımlanan ek fenolik asitler arasında kahverengi, kırmızı ve siyah pirinç ekstraktındaki siringik asit (Ghasemzadeh ve diğerleri, 2018 ; Shao ve diğerleri, 2018 ), kırmızı ve beyaz pirinçteki pinellik asitler ( Kim ve diğerleri, 2014 ), siyah pirinç özütlerindeki hidroksibenzoik asit ( Tantipaiboonwong ve diğ., 2017 ) ve kırmızı pirinç mutantı AM- 425'in özütlerindeki gallik asit (Chiou ve ark., 2018 ). Çözünmeyen sınırda dört diferulik asit (fenolik asit dehidrodimerler) bulunur ( Tablo 1 ; Zhang ve diğ., 2015 ).

    flavanonlar

    Daha sonra üç malonil CoA molekülünün ve 4-koumaroil-CoA'dan birinin moleküllerinin yoğunlaştırılması ve ardından moleküller arası siklizasyonu, daha sonra naringenin kalkonisini üretmek için kalkon sentetaz ile katalize edilir. Naringenin kalkon, flavonları oluşturmak için kalkon izomerazın etkisiyle naringenin içine izomerleştirilir ( Şekil 2 ). Tahılda az miktarda flavon ve flavanol glikozit, özellikle luteolin-6 / 8- C -pentosid-6 / 8- C- heksosid ve bazı apigenin türevleri tespit edilmiştir ( Tablo 1 ). Trikin yolunda, bir flavon sentaz II enzimi naringeni apigenin'e dönüştürür, daha sonra ilk olarak flavonoid 3p-hidroksilaz ile luteonine ve daha sonra O ile trikine dönüştürülür.-metiltransferaz ve chrysoeriol 5p-hidroksilaz ( Park ve diğerleri, 2016 ; Şekil 2 ). Apigenin, luteolin, tricetin, tricin, quercetin ve myricetin, kırmızı ve kahverengi pirinç kepeği ekstrelerinde tespit edilmiştir ( Tablo 1 ; Galland ve diğerleri, 2014 ; Ghasemzadeh ve diğerleri, 2018 ). C-glikosillenmiş flavanonların sentezi, naringenin 2-hidroksiflavanona, daha sonra C-glukosiltransferaz tarafından C-glikosile edilen ve son olarak henüz bilinmeyen bir enzim tarafından dehidre edilen flavanon 2-hidroksilaz ile dönüştürülmesiyle başlar ( Şekil 2 ; Du ve ark. ., 2010 ; Galland ve diğerleri, 2014 ; Sasaki ve diğerleri, 2014 ; Park ve diğerleri, 2016; Poulev ve diğerleri, 2019 ). Pirinçte tanımlanan diğer flavonoid benzeri bileşikler arasında kuersetin-3- O - glukozit, kuersetin-3- O - rutinosid, metoksi-flavanol-3- O -glukozit ve izorhamnetin-3- O - glukozit ( Pereira-Caro ve ark. 2013 ; Kim ve arkadaşları, 2014. ); tricin- O -rhamnoside- O -hexoside ve apigenin-6- Cı -glucosyl-8- Cı -arabinoside beyaz pirinç taneleri, özellikle baskın olan ( Kim ve ark. 2014 ).

    Proantosiyanidinler

    Proantosiyanidinler oligomerler ve flavan-3-ollerin polimerleridir ( Gunaratne ve diğerleri, 2013 ). Sentezleri için evrensel substrat olan Naringenin, flavonoid 3p-hidroksilaz tarafından 3p-hidroksillenir ve eriodisitol üretir; bu daha sonra flavon 3-hidroksilazın etkisi ile dihidrokersetin'e dönüştürülür ( Şekil 2 ). Dihidroflavonol 4-redüktaz, dihidroquercetin'in lökosantosiyanidinlere dönüşümünü katalize eder. Lökosiyanidin, lökosantosiyanidin redüktaz tarafından flavan-3-ol kateşine dönüştürülürken, kateşin monomerleri proantosiyanidin oluşturmak için henüz bilinmeyen bir yolla polimerize edilir ( Şekil 2 ; Zhao ve diğerleri, 2010 ; Galland ve diğerleri, 2014)). Proantosiyanidinler ve kateşinler, kırmızı pirinçte bulunan fenolik bileşiklerin büyük kısmını oluşturur ve perikarpın kırmızı pigmentasyonundan sorumludur ( Pereira-Caro ve diğerleri, 2013 ; Kim ve diğerleri, 2014 ). Beyaz pirinç girişlerinde hiçbir proantosiyanidin saptanmamıştır ( Gunaratne ve ark., 2013 ), bazı siyah pirinç çeşitlerinin bunları içerdiği bildirilmiştir ( Vichit ve Saewan, 2015 ).

    Antosiyanidin

    Lökostosiyanidin, siyanidin, pelargonidin ve delfinidin oluşturmak üzere oksitlenmesi, antosiyanin sentaz ile katalize edilir ( Şekil 2 ; Cheng ve diğerleri, 2014 ; Galland ve diğerleri, 2014 ). Mor ila mavi pigmentasyondan sorumlu olan antosiyaninler, siyah ve mor pirinçte bulunan flavonoidlerin büyük kısmını temsil eder ( Pereira-Caro ve ark., 2013 ; Zhang ve ark., 2015 ). Bileşikler, siyanidin-3- O glukosit ve peonidin-3- O glukosit En belirgin değil, aynı zamanda temsil edilmektedir siyanidin-3,5-diglukozit siyanidin-3- O - (6 "- O - p -coumaroyl) glukozit, pelargonidin-3 O- glukozit, peonidin-3- O - ( 6p- O - p- koumaroil) glukozit ve siyanidin-3- O - arabidosid. Kırmızı ve beyaz pirinç taneleri eksik antosiyanin olarak sınıflandırılmıştır ( Gunaratne ve diğerleri, 2013 ; Xiongsiyee ve diğerleri, 2018 ), ancak her ikisi de Boue ve diğ. (2016) ve Ghasemzadeh ve diğ. (2018) hem kırmızı hem de kahverengi pirinç erişiminde düşük bir seviyeyi tespit edebilmiştir. Kararsız antosiyanidinler, antosiyanin redüktazın etkisiyle renksiz flavan-3-ols epiafzelechin, epikateşin ve epigallokateşine dönüştürülebilir ve glikosile edildiğinde geniş bir dizi farklı molekül üretilir ( Ko vd., 2006 ; Sasaki vd. , 2014; Kim ve diğerleri, 2015 ; Şekil 2 ). Her ne kadar flavonoid yolunda çalışan ana enzimler iyi bilinmesine ve kodlayıcı genleri tanımlanmış olmasına rağmen ( Tablo 2 ), pirinçte bu pigmentlerin sentezinin altında yatan birçok yön henüz tam olarak aydınlatılmamıştır. TABLO 2


    Pirinçte antosiyanin ve proantosiyanidin biyosentezinde rol oynadığı gösterilen düzenleyici ve yapısal genler.
    gezenek Allelik lokus Gen adı Odağı Kimliği
    CHRX a perikarp Referanslar
    Pirinç Ek Açıklama Projesi (RAP) Pirinç Genomu Açıklama Projesi (MSU)
    Düzenleyici genler
    Kala1 Rd OsDFR Os01g0633500 LOC_Os01g44260 1 kırmızı ve siyah Furukawa ve diğerleri, 2006 ; Shih ve ark., 2008 ; Maeda ve ark., 2014 ; Sun ve diğerleri, 2018
    pp 1 kırmızı ve siyah Caixia ve Qingyao, 2007
    Kala3 OsMYB3 Os03t0410000 LOC_Os03g29614 3 Siyah Maeda ve ark., 2014
    Kala4 Pl w OSB1 / Pb / Ra Os04g0557800 LOC_Os04g47080 4 Hu ve diğ., 1996 ; Sakamoto ve diğerleri, 2001 ; Caixia ve Qingyao, 2007 ; Sakulsingharoj ve diğerleri, 2016
    OSB2 Os04g0557500 LOC_Os04g47059 4 Sakamoto ve diğerleri, 2001 ; Sakulsingharoj ve diğerleri, 2014 ; Oikawa ve ark., 2015
    Re Rc -s bHLH Os07g0211500 LOC_Os07g11020 7 Kırmızı Sweeney ve ark., 2006
    Re 7 Kırmızı Furukawa ve ark., 2006
    rc 7 Beyaz Furukawa ve diğerleri, 2006 ; Sweeney ve ark., 2006
    Re-g 7 Kırmızı Brooks ve ark., 2008
    Rc r 7 Kırmızı Ferrari ve ark., 2015
    Re-gl 7 Beyaz Gross ve diğ., 2010
    kromojen OsC1 Os06g0205100 LOC_Os06g10350 6 Siyah Saitoh et al., 2004; Rachasima et al., 2017; Sun et al., 2018
    Structural genes
    Chalcone synthetase (CHS) OsCHS1 Os11g0530600 LOC_Os11g32650 11 Common intermediate Shih et al., 2008
    OsCHS2 Os07g0214900 LOC_Os07g11440 7 Common intermediate
    Chalcone isomerase (CHI) OsCHI Os03g0819600 LOC_Os03g60509 3 Common intermediate Shih et al., 2008
    Flavanone 3-hydroxylase (F3H) OsF3H-1 Os04g0662600 LOC_Os04g56700 4 Common intermediate Kim et al., 2008
    OsF3H-2 Os10g0536400 LOC_Os10g39140 10
    OsF3H-3 Os04g0667200 LOC_Os04g57160 4
    Flavanone 3′-hydroxylase (F3′H) OsF3′H Os10g0320100 LOC_Os10g17260 10 Common intermediate Shih et al., 2008
    Leucoanthocyanidin reductase (LAR) OsLAR Os03g0259400 LOC_Os03g15360 3 Black rice Kim et al., 2015
    Anthocyanidin synthase (ANS) OsANS1 Os01g0372500 LOC_Os01g27490 1 Black rice Shih et al., 2008
    OsANS2 Os06g0626700 LOC_Os06g42130 6
    UDP-glycosyltransferase (UF3GT) OsUGT Os06g0192100 LOC_Os06g09240 6 Black rice Yoshimura et al., 2012
    Os07g0148200 LOC_Os07g05420 7 Black rice
    Anthocyanin reductase (ANR) OsANR Os04g0630800 LOC_Os04g53850 4 Siyah pirinc Kim ve ark., 2015
    Ayrı bir pencerede aç
    bir CHRX: kromozom.

    Pirinç Tahıl Pigmentasyonunun Genetik Temelleri

    Pirinç genomu, kalkon sentetazı kodlayan en az iki geni barındırır: kromozom 11 üzerinde CHS1 ve kromozom 7 üzerinde CHS2 ( Shih ve diğerleri, 2008 ; Han ve diğerleri, 2009 ; Cheng ve diğerleri, 2014 ), her biri flavanon biyosentezine katkıda bulunur. Proantosiyanidinlerin üretimi için, üç flavon 3-hidroksilaz önemlidir: yani F3H-1 (kromozom 4), F3H-2 (kromozom 10) ve F3H-3 (kromozom 4; Kim ve diğerleri, 2008 ; Park ve diğ. , 2016 ). İki antosiyanin sentaz antosiyaninlerin sentezi için kritiktir, yani ANS1 (kromozom 1) ve ANS2(kromozom 6) ( Shih ve diğerleri, 2008 ; Tablo 2 ). Ata'nın pirinç kırmızı Pericarp Rc rolü


    Pirincin evcilleştirilmesi sırasında beyaz taneli pirinç seçildi. Temel bir sarmal döngü-sarmal (bHLH) transkripsiyon faktörünü kodlayan iki tamamlayıcı gen Rc (kromozom 7 üzerinde) ve proantosiyanidin birikimini arttıran bir enzim olan Rd (kromozom 1), birlikte kırmızı perikarp renginden sorumludur. Rc , paramparça olma ve tahıl dinlenmesi ile yakından ilişkilidir ( Sweeney ve ark. 2006 ), bu nedenle evcilleştirme sırasında seçilmiştir. Rc-Rd genotipleri kırmızı tane üretirken, Rc-rd genotipleri kahverengi tane üretir ( Furukawa ve ark. 2006 ). Üç ortak Rcaleller vahşi tip Rc ve mutant aleller Rc-s ve rc'dir . Rc-s , erken durdurma kodonunun varlığı nedeniyle Rc'den farklıdır, rc ise vahşi tip sekansının 14 bp'lik bir gerilmesinden yoksundur ( Furukawa ve ark. 2006 ; Sweeney ve ark. 2006 ). RC taşıyıcıları renksiz bir perikarp üretirken, Rc-s taşıyıcıları bir dizi perikarp pigmentasyonu üretir ( Sweeney ve ark., 2007 ). Bir dizi varyantın, vahşi tip (kırmızı) perikarp pigmentasyonunu restore ettiği tespit edilmiştir: Rc-g , 14 bp rc'nin yukarısında 1 bp silme 20 bp taşır.delme ( Brooks ve diğerleri, 2008 ), Rc r ise 14 bp segmentinin yukarısındaki 44 bp'lik bir silme özelliğine sahiptir, bu da vahşi tip okuma çerçevesini geri yükler ( Ferrari ve diğerleri, 2015 ). Afrika evcil pirinç (çoğu çeşitleri Oryza glaberrima ) kırmızı bir pericap'ı üretmek ve beyaz varyantları bir kayıp fonksiyon-mutasyonu taşıyan Re . Bunun bir istisnası, Rc-s nokta mutasyonu alanının yukarısında bir erken durdurma kodonu 146 bp taşıyan O. glaberrima'ya özgü mutasyon rc-gl'dir ( Gross vd., 2010 ).

    Mor Pirinç Rengi Etkileyen Düzenleyici Kaskad

    Antosiyaninler pirinç tanesindeki siyah-mor pigmentasyondan sorumludur. Pigmentasyon yoğunluğunda görülen varyasyon, özelliğin henüz tanımlanmamış genler içeren poligenik kontrol altında olduğu anlamına geldiği kabul edilmiştir ( Ham ve ark., 2015 ). Bazı yayınlar, her biri sadece karışıklığa katkıda bulunan farklı bir gen kodlama sistemini benimseyen antosiyanin üretimini düzenleyen pirinç genlerinin tanımlanmasını bildirmektedir. Göre Hu ve ark. (1996) 'da iki düzenleyici gen sınıfı ( R / B ve C1 / Pl ) hem antosiyanin birikimini hem de birikiminin düzenlenmesini yönetmektedir. İki R geni karakterize edilmiştir: Ra kromozom 4 ve Rb'ye eşlenirEski genin mısır R / B geninin bir homologu olduğu düşünülmektedir . Pl (kromozom 4) olmak üzere üç alel tanımlanmıştır, bunlar Pl w , Pl i ve Pl j'dir ve her biri farklı bir pigmentasyon paterninden sorumludur. Pl w , pirinç bitkisinin hava kısımlarının çoğunda antosiyanin sentezini aktive eder (gövde veya internodda olmasa da). Pl lokusu limanlar iki gen, OSB1 ve OSB2 bir bHLH transkripsiyon faktörünü kodlayan her biri, ( Tablo 2 ; . Sakamoto ve arkadaşları, 2001). Diğer çalışmalar, mor perikarp özelliğinin , sırasıyla 4 ve 1 kromozomlarına eşlenen baskın tamamlayıcı genler Pb ( Prp-b eş anlamlısı ) ve Pp ( Prp-a eş anlamlısı ) tarafından genetik olarak belirlendiğini bulmuştur ( Tablo 2 ; Rahman ve ark., 2013) ; Ham ve diğ., 2015 ). Pb ürünü, kahverengi tanenin perikarpında pigment birikmesinden sorumlu gibi görünse de, Pp ürünü mor taneye neden olan pigment miktarını arttırır. Mevcut Pp geninin kopya sayısı mor pigmentasyonun yoğunluğu ile ilişkilidir ( Rahman ve diğ., 2013). Yokluğunda Pp , bitkilerin Barınma Pb kahverengi perikarp ile üretmek tahıl, pericarp ise Pp taşıyıcılar, eksik Pb , beyaz ( Rahman et al. 2013 ). Pb'nin iki genin lokusu içerir, bir Myc transkripsiyon faktörü ( Ra ) ile birlikte, bHLH16 . BHLH16 ise, sentez proantosiyanidin ile ilgili olduğu gösterilmiştir , Ra antosiyanin sentez yer almaktadır. Ra ve OSB1'in eş anlamlı fonksiyonlara sahip olduğuna inanılmaktadır ( Hu ve diğerleri, 1996 ; Sakamoto ve diğerleri, 2001 ;Caixia ve Qingyao, 2007 ). Ra'nın ekson 7'sindeki 2 bp (GT) eklenmesi mor pigmentasyonu ortadan kaldırır ( Caixia ve Qingyao, 2007 ; Lim ve Ha, 2013 ; Rahman ve diğerleri, 2013 ). Benzer şekilde Sakulsingharoj ve ark. (2016) , ekson 8'de 1 bp'lik bir guanin nükleotitin silinmesi ile birlikte 64 pozisyonunda metionin ikamesi için bir treonin ile sonuçlanan beyaz bir tane ile sonuçlanan OSB1'in ekson 7'sine 2 bp (GT) sokulmasının olduğunu bulmuşlardır. fenotip. Üç lokus Kala1 (kromozom 1), Kala3 (kromozom 3) ve Kala4 (kromozom 4) taşıyıcıları siyah perikarp özelliğini ifade eder ( Maeda ve ark., 2014). Kala4'ün Pb ile , Kala1'in ise Pp ile eş anlamlı olduğu ileri sürülmüştür . Kala4 bir bHLH transkripsiyon faktörünü kodlar ve OSB2'ye karşılık gelir ( Tablo 2 ). OSB2 dahil antosiyanin sentezinde rol oynayan enzimleri kodlayan genlerin bir dizi düzenleyen F3H , DFR , ve ANS ( Sakulsingharoj ve ark. 2014 ). Kalal ihtiva eden kromozomal bölge Rd (dihidroflavonol 4-redüktaz) içerir. Kala3 olasılıkla ile eşanlamlı olacak MYB3 ( Maeda ve ark. 2014). Tropikal meydana gelen siyah tane fenotipi Japonica germplazmında yapısal varyantları atfedilmiştir Kala4 promotör sekansı. Oikawa ve diğ. (2015) ileri sürmüştür Kala4 birkaç kez introgres edildi japonika için indica germplazm.

    R2R3-MYB transkripsiyon faktörü Os06g0205100 için bir aday olarak önerilmiştir Cı olası bir aktivatör olarak saptanmıştır, gen DFR ve ANS ( Saitoh ve ark., 2004 ; Rachasima ve arkadaşları 2017. , Sun ve arkadaşları 2018. ). Os01g0633500 ( A1 ), antosiyanin sentezinde rol oynayan bir dihidroflavonol redüktaz genidir ( Tablo 2 ). Böylece, A1 ve C1 , tanenin mor rengini belirler. S1 geni ( Os04g0557500) bir bHLH proteinini kodlar ve gövdeye özgü pigmentasyona katkıda bulunur. Her iki işlevsel kopyasının mevcudiyeti C1 ve S1 ürünü ise, gövde pigmentasyonu için gerekli olduğu gösterilmiştir A1 mor gövdelerin geliştirilmesi için bir katalizör (olarak hareket Sun ve ark. 2018 ). Antosiyanin pigmentasyon paterni, A1 , C1 ve S1'in alelik durumu ile belirlenir ( Sun ve diğerleri, 2018 ). Bazı yazarlar, örneğin C1 ve OSB2 gibi bir dizi düzenleyici genin dizi varyantlarını pirinç tanesi pigmentasyonundaki fenotipik varyasyon ile ilişkilendirmeye çalışmıştır (Sakulsingharoj ve diğerleri, 2016 ; Rachasima ve diğerleri, 2017 ; Sun ve diğerleri, 2018 ). Lachagari ve diğ. (2019) 108 pirinç hattında karşılaştırmalı genomik gerçekleştirdi ve flavonoid yola, sitokinin glukozit ve mor pigmentasyonla ilişkili betanidin bozunma biyosentezine ait bir dizi gende yeni allelik varyantlar belirledi. Her ne kadar tahıl pigmentasyonundan sorumlu bir dizi gen tanımlanmış olsa da ( Tablo 2 ), yine de ilave genlerin ve bunların varyantlarının keşfedilme olasılığı vardır.


    Kantitatif Özellik Lokasyonu Analizinden veya Genom Geneli Birlik Çalışmalarından Çıkarılan Tahıl Pigmentasyonunun Genetik Temeli

    Tahıl pigmentasyonunun genetik temelini çıkarmanın bir aracı olarak kantitatif özellik lokus (QTL) haritalama yaklaşımından yararlanmak için bir dizi girişimde bulunulmuştur ( Tablo 3 ). Tan ve diğ. (2001) , rekombinant inbred hat (RIL) popülasyonunda un pigmentasyonunun analizinde dokuz QTL belirlemiştir. Üç QTL, CIE 1976 renk parametresindeki L ∗ (açıklık), ikisi ∗ (kırmızı-yeşil) ve dördü b ∗ (sarı-mavi) cinsinden varyasyonu yansıttı . “Kasalath” (kırmızı perikarp) ve “Koshihikari” (beyaz perikarp) pirinç çeşitleri arasındaki bir çarpıdan yapılmış bir çapraz geçişli RIL popülasyonunda Dong ve ark. (2008)kırmızı pigmentasyonda altta yatan dört QTL varyasyonu saptadı, en büyük iki QTL etkisi Rc ve Rd ile birlikte yerleşti , iki küçük QTL etkisi yeniydi. Bir analiz tarafından gerçekleştirilen Matsuda ve diğ. (2012) flavonoid içeriğinin flavon glikosilasyonu kontrol eden genetik faktörler tarafından yönetildiğini ileri sürmüşlerdir. Yakın tarihli bir çalışmada, antosiyanin ve proantosiyanidin içeriğinde ve bileşiminde değişiklikten sorumlu 21 QTL tanımlanmıştır ( Xu ve ark., 2017 ). Bazıları halihazırda bilinen genler tarafından işgal edilen yerlere eşlenirken, diğerleri daha önce pirinç tanesi pigmentasyonuna dahil olan genleri tanımlayan genomik bölgelere eşlendi. TABLO 3


    Renklendirilmiş ilgili özellikler, antosiyanin ve proantosiyanidin için nicel özellik lokusları tanımlanmıştır.
    Hayır. nüfus Boyut İşaretleyiciler Özellik kategorisi QTL / QTNs En yakın yapısal ve / veya düzenleyici genler Kromozom Etki (%) Referanslar
    1 RILS 238 162 RFLP ve 48 SSR Un rengi 9 1,3,4,5,6,7,8 4,3-25,4 Tan ve diğerleri, 2001
    L * (3) 5,6,8 4,5-15,7
    a * (2) 4,7 6,9-10,5
    b * (4) 1, 3,6,8 4,3-25,4
    2 BRILs 182 162 RFLP Kırmızı renk derecesi 4 1,7,9,11 2,1-83,7 Dong ve diğ., 2008
    q DRC-1 * Rd 1 3,6-3,7
    q DRC-7 * Re 7 75,9 -83,7
    q DRC-9 9 2,1-3,2
    q DRC-11 11 3,3-3,4
    3 RILS 182 126 SSR Antosiyanin ve proantosiyanidin 21 1,2,3,7,8,10,12 3,8-34,8 Xu ve diğ., 2017
    ANC (8) 1,2,3,7,10 8,8-34,8
    PAC (13) 1,2,7,8,10,12 3,8-17,0
    4 Çeşitlilik paneli 416 100 SSR ve 10 gen markeri Tahıl rengi 25 1,4,6,7,8,9,10,11,12 1,39-86,68 Shao ve diğ., 2011
    L * (3) Ra , Rc 4,7,10 4,96-31,23
    a * (8) Ra , Rc 1,4,7,8,9,11,12 1,51-19,65
    b * (6) Ra 4,6,8,9,10 4,38-49,82
    c (3) Ra 4,8,10 1,39-3,99
    H ° (5) Ra 4,6,8,9 5,4-86,68
    Fenolik ve flavonoid içeriği 10 4,7,8,9,10 2,64-39,67
    PC (4) Ra , Rc 4,7,8,9 5,87-39,67
    FC (6) Ra , Rc 4,7,8,9,10 2,64-35,35
    5 Çeşitlilik paneli 203 veri sıralama Perikarp rengi (PC) 4 7,10 Wang ve ark., 2016
    Re-larındaki Re-larındaki 7
    qPc10 F3H 10
    6 Çeşitlilik paneli 244 122,785 SNP Kırmızı tohum rengi snp_07_6067391 bHLH Butardo ve ark., 2017
    7 Çeşitlilik paneli 419 208,993 SNP Pericarp color_whole panel 763 1,3,4,7,8,10,11 Yang ve diğerleri, 2018
    Rd 1
    MYB ailesi transkripsiyon faktörleri 10,11
    WD alanı, protein içeren G-beta tekrar alanı 8
    Perikarp rengi_ indica 99
    MYB ailesi transkripsiyon faktörleri 10,11
    OsCHI 3
    Kala4 4
    Re 7
    WD alanı, protein içeren G-beta tekrar alanı 8
    OsCHI 3
    Kala4 4
    Re 7
    Ayrı bir pencerede aç
    RIL'ler, rekombinasyon inbred hatları; BRIL'lar, geriye çapraz rekombinant inbred çizgiler.
    QTL haritalandırmasına ( Korte ve Farlow, 2013 ) göre belirli avantajlara sahip olan genom geniş birliktelik çalışması (GWAS) yaklaşımı, tahıl pigmentasyonunun genetik temelini belirlemek için birkaç vakada uygulanmıştır ( Tablo 3 ). Shao ve diğ. (2011) , tahıl pigmentasyonu için 25 marker-özellik ilişkisini tanımlamak için GWAS'ı kullandı: bazıları pigment yoğunluğu, diğerleri ton açısı, L ∗ , a ∗ veya b ∗ . Analizleri Ra ve Rc'nin önemini doğruladı . Butardo ve diğ. (2017) ile bağlantılı tek nükleotid polimorfizm noktaları (SNP), bir dizi ortaya çıkarmak için GWAS kullanılan Rc. Yang ve ark. Tarafından ortaya çıkarılan perikarp pigmentasyonu ile ilişkili 763 SNP . (2018) 12 pirinç kromozomundan 6'sına eşleştirilmiştir (kromozom 1, 3, 4, 8, 10 ve 11); daha önce tanımlanmış yapısal veya düzenleyici genlere yakın en önemli derecede ilişkili SNP'lerin bazıları, ancak diğerleri daha önce pirinç tanesi pigmentasyonundaki değişiklikle ilişkili olmayan bölgelerle eşleşir.

    Tahıl Pigmentasyonunun Mekanik Temelini Çözmek İçin Alınan Omikler Yaklaşımları

    Transkriptomik, proteomik ve metabolomikler dahil olmak üzere yüksek verimli genomikler, hedef özelliklerin altında yatan biyokimyasal yolların çözülmesine katkıda bulunmuştur. Genetiği, sistem biyolojisi araçlarıyla birleştirerek, hedef genomik bölgeler, pirincin önemli besin özelliklerini etkileyen aday genleri ve proteinleri tanımlamak için daraltılmıştır ( Butardo ve ark., 2017 ; Anacleto ve ark., 2019 ).

    Pigmentli ve pigmentsiz pirinç taneleri arasındaki diferansiyel transkriptomik analizler, flavonoid yol genlerinin regülatörlerini ve akış aşağı hedeflerini tanımladı ( Oh ve diğerleri, 2018 ). Siyah pirincin yüksek antosiyanin içeriğine, antosiyanidin sentaz kodlayan genlerin daha fazla transkripsiyonu eşlik ederken, kırmızı pirincin karakteristiği olan yüksek proantosiyanin içeriğine, lökosiyanidin redüktaz kodlayan bir gen için kayda değer miktarda transkript eşlik etmiştir ( Chen ve diğerleri, 2013 ). . Kalkon sentetaz, kalkon izomeraz, flavanon 3-hidroksilaz, dihidroflavonol 4-redüktaz ve antosiyanin sentetazı kodlayan genlerin transkript bolluğu, Lim, Ha (2013) ile beyaz, siyah ve kırmızı pirinç tanelerinde karşılaştırılmıştır.. Dört gen pigmentli tane çeşitlerinde belirgin bir şekilde yukarı regüle edilirken kalkon izomerazı kodlayan gen, hem beyaz hem de pigmentli çeşitlerde benzer bir transkripsiyon seviyesi sergiledi. Bazı siyah çeşitlerde görülen kalkon sentetaz, flavanon 3-hidroksilaz ve antosiyanin sentetaz transkriptlerinin artan bolluğu, transkripsiyon ve pigment içeriği arasında güçlü bir korelasyon anlamına geliyordu. Sun ve diğ. (2018) flavonoid yol genlerinin üçlü MYB-bHLH-WD40 transkripsiyon kompleksleri tarafından düzenlendiğini bulmuşlardır ( Xu ve ark., 2013 ; Zhang ve ark., 2018). Siyah ve beyaz pirincin mikrodizilim temelli karşılaştırması, 137'sinin 10 farklı sınıftan birine ait transkripsiyon faktörlerini kodladığı tahmin edilen yaklaşık 1.300 farklı transkripsiyonlu gen tespit etmiştir ( Kim ve ark., 2011 ). Tüm Kim ve ark. (2018) , diferansiyel transkripsiyonu analiz etmek için RNA-seq uyguladı, BBX14 tarafından kodlanan B-kutusu proteininin antosiyanin sentez yolunun önemli bir düzenleyicisi olduğu sonucuna varıldı . Pigmentli tahılda antosiyanin üretimi, temel lösin fermuar transkripsiyon faktörü HY5 ile birlikte BBX14 tarafından uyarılmış ve ince ayarlanmıştır. Hem yüksek ışık yoğunluğunda ışınlama hem de bitkinin şeker içeriği antosiyanin ve proantosiyanin sentezini etkileyebilir ( Xu vd., 2013 ;Ma ve diğ., 2018 ; Zhang ve ark., 2018 ). Bu nedenle, pigmentli pirinçte fotoreseptör ve ışık sinyali iletim elemanları arasındaki bağlantıları araştırmak değerlidir ( Teng ve diğerleri, 2005 ). Transkriptomik analizler, sekonder metabolitlerin transkripsiyonel regülasyonuna ışık tutmayı başarmış olsa da, transkripsiyon sonrası ve translasyon sonrası süreçlerin çözülmesi, tahıl pigmentasyonunun hız sınırlayıcı adımlarının kimliğine dair daha fazla bilgi sağlayabilir ( Merchante et al., 2017) ; Spoel, 2018 ).

    Belli bir transkriptin ve bunun translasyon ürününün bolluğu, transkripsiyon sonrası düzenleme, çeviri ve translasyon sonrası işlem ve peptit modifikasyonu nedeniyle her zaman doğrusal olarak ilişkili değildir ( Chen ve diğerleri, 2017 ; Zhang ve diğerleri, 2017 ). Dolayısıyla, bir proteomik analiz, pigmentli ve pigmentsiz taneler arasındaki farkların, bir transkriptomik analizden mümkün olandan daha ince bir resmini verebilir. Çeşitli metabolik süreçlerde yer alan toplam 230 farklı bol miktarda protein, Chen ve ark. (2016)tane gelişiminin beş aşamasında örneklenen siyah ve beyaz taneler arasındaki bir karşılaştırmadan elde edilmiştir. Flavonoidlerin ve şekerlerin sentezinde yer alan bir dizi proteinin siyah tanede daha bol olduğu, sinyal iletimi, redoks homeostazı, fotosentez, azot metabolizması ve tokoferol sentezi ile ilişkili proteinlerin daha az olduğu bulunmuştur. Özellikle, kalkon sentetaz, antosiyaninin sentezi için gerekli anahtar bileşen olarak saptanmıştır.

    Metabolomik analizler pirincin hücresel bileşimini karakterize etmek için de başarıyla kullanılmıştır ( Tablo 1 ). Siyah, kırmızı ve renksiz pirinç karşılaştırmalı metabolome çalışmaları, çeşitli antosiyaninlerin, tokoferol, yağ asidi metil esterleri, serbest şekerler ve yağ asitlerinin önemli ölçüde farklı olduğunu ortaya koymuştur ( Frank ve ark., 2012 ). de Guzman ve diğ. (2017) besin kalitesi ve glisemik yanıtı bakımından farklı pirinç çeşitlerinin bir ekranında 1000'den fazla metaboliti izleyebilmiştir ( de Guzman ve ark., 2017 ). Farklı pirinç girişlerinin tahıl metabolomlarının karşılaştırılması, bu düzeyde önemli derecede bir varyasyon olduğunu ortaya koymuştur ( Gong ve diğerleri, 2013 ;Pereira-Caro ve ark., 2013 ). Bununla birlikte, tahıl metaboloması son derece dinamiktir, bitkinin dış ortamına güçlü bir şekilde tepki verir, bu nedenle bu varyasyon genetik ve çevresel varyasyonun ve bunun etkileşiminin bir sonucudur. Bununla birlikte, bireysel metabolitler arasında yapılan korelasyon analizleri, tahıl metabolomun düzenlenmesini, ortak genetik faktörlerin kontrolü altında olduğu görülen birlikte birikmiş metabolit kümeleriyle ortaya çıkarmıştır ( Matsuda ve diğerleri, 2012 , 2015 ).

    'Omik tabanlı platformların uygulama tane pigment parametrelerinin genetik ve biyokimyasal temellerini açıklamaya başlamışlardır * , b * , L * , renk tonu ve kroma. Transkriptomik ve metabolomik analizler, flavonoid sentezinin çekirdek bileşenlerini etkileyen bazı önemli yapısal ve düzenleyici genleri tanımlasa da ( Lee ve ark., 2015 ; Oh ve ark., 2018 ), hala eksik olan, anahtar metaboliklerin altında yatan moleküler makinelerin kapsamlı bir şekilde anlaşılmasıdır. tanenlerin polimerizasyonu ve taşınması gibi işlemler. Düzenleyici ağlar arasındaki bağlantıların belirlenmesine odaklanan daha entegre bir yaklaşım gerekmektedir ( Şekil 2)). Çeşitli veri kümelerinin birleştirilmesi, düzenleyici ağların yeniden oluşturulmasını ve anahtar modülatörlerin tanımlanmasını kolaylaştırır ( Butardo ve ark., 2017 ; Wambugu ve ark., 2018 ). Örnek olarak, tahıl amiloz-amilopektin bileşimini etkileyen anahtar genetik etkilerin araştırılması, biri kromozom 6'da diğeri 7 kromozomunda olmak üzere iki genomik bölgeyi etkilemiştir ( Butardo ve ark., 2017 ). Kromozom 7 üzerindeki genetik bölge, Rc civarındadır ve artmış amiloz ve azalmış kısa zincirli amilopektin birikimi ile ilişkili bir haplotip içerir. Rc tarafından kodlanan bHLH transkripsiyon faktörüdihidroflavonol 4-redüktazı kodlayan geni aktive eder, böylece kırmızı pigmentasyon oluşumunu etkiler. Aynı transkripsiyon faktörünün, granüle bağlı nişasta sentaz aktivitesini düzenleyen ağa bağlandığı için nişasta yapısının bir regülatörü olarak da hareket ettiği ileri sürülmüştür.

    Gelecekteki Islah için Pigmentli Pirinç Tarlalarının Korunması ve Kullanılması

    Pigmentli taneli pirinç tarlaları, pirincin iyileştirilmesi için önemli bir genetik rezervuarı temsil etse de, daha verimli, modern beyaz pirinç çeşitlerinin getirilmesi sonucunda bu popülasyonlar hızla kaybedilmektedir. Bu materyallerin bazıları , Uluslararası Pirinç Araştırma Enstitüsü 2 tarafından küratörlüğünde olan büyük gen bankası gibi ex situ gen bankalarında korunmuştur.. Bu toprakların birkaçı, sistematik olarak tahıl son kullanım kalitesi, besin özellikleri ve potansiyel sağlık yararları açısından karakterize edilmiştir. Bu nedenle, bu materyallerle ilişkili geleneksel bilgiyi bilimsel temelli analizlerle doğrulamaya acil ihtiyaç vardır. Arazi malzemelerinin verimliliği şüphesiz modern beyaz pirinç çeşitlerinden daha düşük olsa da, besleyici gıdalar için artan tüketici tercihi göz önüne alındığında, piyasa değerleri potansiyel olarak oldukça yüksektir ( Islam ve diğerleri, 2018 ). Geleceğe bakacak olursak, yetiştirme programlarının üretken pigmentli çeşitler geliştirmeleri için büyük bir fırsat vardır ( Voss-Fels ve diğerleri, 2019 ).

    Tahıl pigmentasyonunun kalıtım tarzını anlamak, bu özelliklerin altında yatan anahtar genlerin faydalı alellerini tanımlamak ve özelliğe özgü belirteçler geliştirmek, yüksek verimli pigmentli pirinç çeşitlerini üretme çabalarının hızlandırılmasına katkıda bulunacaktır. Pigmentli çizgilerin ileri nesil yetiştirme hatları geliştirilmiştir ( Bhuiyan ve diğerleri, 2011 ; Arbelaez ve diğerleri, 2015 ). Önde gelen bir Japon beyaz pirinç çeşidinin (Koshihikari) genetik arka planında bir siyah pirinç hattı geliştirilmiştir; yaygın olarak yetiştirilen siyah pirinç çeşidi olan “Okunomurasaki” ye göre daha üstün yeme kalitesine sahip olan ( Maeda ve ark., 2014)). Kazakistan'daki büyüme koşullarına adapte edilen pigmentli çeşitler geliştirmek için pigmentli ve pigmentsiz çeşitler arasında haçlar başlatılmıştır ( Rysbekova ve diğerleri, 2017 ). Tayland aromatik, koyu mor indica tipi pirinç çeşidi “Riceberry” sağlığı geliştirici özellikleriyle ün kazanmıştır. Riceberry, biri yerel, yapışkan olmayan mor pirinç ve diğeri aromatik beyaz yasemin pirinci olmak üzere iki önemli pirinç çeşidinin arzu edilen özelliklerini birleştirir ( Waiyawuththanapoom ve diğerleri, 2015 ; Gene Discovery Rice ve Rice Science Center, 2017 ). Brezilya'da iki geliştirilmiş pigmentli çeşit (kırmızı pirinç “Rubi” ve siyah pirinç “Onix”) piyasaya sürülmüştür ( Wickert ve diğerleri, 2014 ).

    Şuraya git: Sonuç


    Pigmentli pirinç çeşitleri tüketiciler arasında popülerlik kazanıyor ve talebin sadece artması bekleniyor. Pigmentli pirincin tohum tedarik zinciri zayıftır ve bu nedenle pirinç değer zinciri fırsatları mevcut beslenme talebini karşılamak için gelişmelidir. Landraces kullanarak pigmentli pirinç üretimi, pazar talebini karşılayamaz ve bu landrace materyallerinin genetik olarak iyileştirilmesi gerektiğini vurgular. Uluslararası Pirinç Araştırma Enstitüsü'nün gen bankası ve pigmentli girişler de dahil olmak üzere Africa Rice 3 tarafından küratörlü 130.657 katılımın sistematik beslenme karakterizasyonu, daha düşük gelirli hedef ülkelere ulaşan beslenme çeşitlendirmesi için yeni yollar yaratacaktır. Bunlar ve diğer ulusal ex situkoleksiyonlar, pigmentli pirincin iyileştirilmesi için değerli bir genetik varyasyon kaynağını temsil eder, tahıl pigmentasyonunun ve temel beslenme ile ilgili özelliklerin genetik temelini açıklayan materyaller sağlar. Flavonoid metabolizmasını ve tahıl pigmentasyonunu etkileyen henüz bilinmeyen genleri tanımlama süreci, tüm genom yeniden sekanslaması ile hızlandırılabilir ve yeni allelik varyantların markör olarak kullanılmak üzere kullanılmasına izin verilir. Proantosiyanidinler ve antosiyanin ile ilişkili ince eşlenmiş genetik bölgelerin, bu besin özelliklerinin yüksek verimli pirinç arka planlarına marker destekli seçim üremesini desteklemek için kalite belirteçleri geliştirmek için yapılması gerekmektedir. Diyet temelli sağlık yararlarının sonuçlarını incelemek için bir sistem yaklaşımı, tahıl pigmentasyonunu tüketmenin insan sağlığı yararlarının moleküler temelinin bütünsel bir şekilde anlaşılmasını gerektirecek ve bu da dahil olan modülatörlerin tanımlanmasının hedef topluluklardaki hakim çift yük yetersiz beslenmesini ve bulaşıcı hastalıkların üstesinden gelmesini sağlayacaktır. Pigmentli pirinci tüketmek için birçok sağlık yararı olduğu görülürken, dokusunun ve lezzetinin zayıf olduğu ve dolayısıyla kabul oranının daha düşük olduğu bulunmuştur. Bu sınırlamayı gidermek için, öğütülmüş endospermde flavonoidlerin tutulması için genetik varyasyonu araştırmamız gerekir. Pigmentli pirinci tüketmek için birçok sağlık yararı olduğu görülürken, dokusunun ve lezzetinin zayıf olduğu ve dolayısıyla kabul oranının daha düşük olduğu bulunmuştur. Bu sınırlamayı gidermek için, öğütülmüş endospermde flavonoidlerin tutulması için genetik varyasyonu araştırmamız gerekir. Pigmentli pirinci tüketmek için birçok sağlık yararı olduğu görülürken, dokusunun ve lezzetinin zayıf olduğu ve dolayısıyla kabul oranının daha düşük olduğu bulunmuştur. Bu sınırlamayı gidermek için, öğütülmüş endospermde flavonoidlerin tutulması için genetik varyasyonu araştırmamız gerekir.

    Yazar Katkıları


    EM ve NS el yazmasını hazırladı. TK, HJ, NE, CB ve LB bölümlerin bir kısmını düzenledi.

    Çıkar çatışması


    Yazarlar, araştırmanın potansiyel bir çıkar çatışması olarak yorumlanabilecek ticari veya finansal ilişkilerin yokluğunda yürütüldüğünü beyan etmektedir.


    Finansman. Yazarlar İngiltere Biyoteknoloji ve Biyolojik Bilimler Araştırma Konseyi'nin Newton Fonu Sürdürülebilir Pirinç Araştırma Girişimi'ne (Proje BB / N013603 / 1) finansal desteği için teşekkür eder.


    1 https://www.un.org/development/desa/...ects-2019.html

    2 www.irri.org/international-rice-genebank

    3 www.genebanks.org/genebanks/africarice/

    Şuraya git: Referanslar
    • Ahuja U., Ahuja S., Chaudhary N., Thakrar R. (2007). Kırmızı pirinç - geçmiş, şimdi ve gelecek. Asya Agri Hist. 11 291-304. [ Google Akademik ]
    • Anacleto R., Badoni S., Parween S., Butardo VM, Misra G., Cuevas RP, et al. (2019). Pirinçte glisemik indeksi ve dokuyu etkileyen genetik bölgeleri tahmin etmek için geniş çaplı bir transkriptom analizi ile genom geniş bir ilişki çalışmasının entegre edilmesi. Bitki Biyoteknol. J. 17 1261–1275. 10.1111 / pbi.13051 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Arbelaez JD, Moreno LT, Singh N., Tung CW, Maron LG, Ospina Y., vd. (2015). İki yabani pirinç türü kullanılarak introgresyon hatlarının (IL) geliştirilmesi ve GBS-genotiplendirilmesi. O. meridionalis ve O. rufipogon, tekrarlayan ortak bir ebeveynte O. sativa cv. Curinga. Mol. Doğurmak. 35 81 . 10.1007 / s11032-015-0276-7 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Eşref H., Murtaza I., Nazir N., Wani AB, Naqash S., Husaini AM (2017). Keşmir Himalayaların pigmentli ve kokulu pirinç genotiplerinin besinsel profili. J. Pharmacogn. Phytochem. 6 910–916. [ Google Akademik ]
    • Baek JA, Chung NJ, Choi KC, Hwang JM, Lee JC (2015). Pigmentli pirinçten elde edilen gövde özleri, toplam flavonoid içeriği ile ilişkili antioksidan etkiler sergiler ve insan kanser hücrelerinde apoptozu indükler. Gıda Sci. Biotechnol. 24 241-247. 10.1007 / s10068-015-0032-0 [ CrossRef ] [ Google Akademik ]
    • Banjerdpongchai R., Wudtiwai B., Sringarm K. (2013). Mor pirinç özlerinin ve kemoterapötik ilaçların insan kanser hücre hatları üzerindeki sitotoksik ve apoptotik indükleyici etkileri. Asya Pasifik J. Cancer Prev. 14 6541-6548. 10.7314 / apjcp.2013.14.11.6541 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Berni R., Id CC, Romi M., Hausman J., Guerriero G., Cai G. (2018). Agrobiyoteknoloji çılgına dönüyor: biyoaktif madde kaynağı olarak eski yerel çeşitler. Int. J. Mol. Sci. 19 : E2248 . 10.3390 / ijms19082248 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Bhat F., Riar C. (2015). Ilıman bölgelerin geleneksel pirinç çeşitlerinin sağlık yararları. Med. Aromat. Bitkiler 4 3–5. 10.4172 / 2167-0412.1000198 [ CrossRef ] [ Google Akademik ]
    • Bhuiyan MAR, Narimah MK, Rahim HA, Abdullah MZ, Wickneswari R. (2011). Transgresif elde edilen yüksek verim potansiyeline sahip kırmızı perikarp tahıl çeşitleri Oryza rufipogon x Oryza sativa : tarla değerlendirmesi, yüksek hastalığı, agronomik özellikler için QTL doğrulama ve arka plan marker analizi için tarama. Tarla Bitkileri Arş. 121 232-239. 10.1016 / j.fcr.2010.12.012 [ CrossRef ] [ Google Akademik ]
    • Boue SM, Daigle KW, Chen M.-H., Cao H., Heiman ML (2016). Mor ve kırmızı pirinç ( Oryza sativa L.) kepek özlerinin antidiyabetik potansiyeli . J. Agric. Food Chem. 64 5345-5353. 10.1021 / acs.jafc.6b01909 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Breseghello F. (2013). Pirinç örnekleriyle geleneksel ve modern bitki ıslah yöntemleri ( Oryza sativa L.). J. Agric. Food Chem. 61 8277–8286. 10.1021 / jf305531j [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Brooks SA, Yan W., Jackson AK, Deren CW (2008). RC'deki doğal bir mutasyon beyaz pirinç-perikarpı kırmızıya döndürür ve yeni, baskın, vahşi tip bir alele neden olur: Rc-g . Theor. Baş. Genet. 117 575-580. 10.1007 / s00122-008-0801-8 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Butardo VM, Jr., Anacleto R., Parween S., Samson I., Guzman K., De, vd. (2017). Sistem genetiği, amiloz sentezinin yeni bir düzenleyici alanını tanımlar. Bitki Physiol. 173 887-906. 10.1104 / pp.16.01248 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Caixia W., Qingyao S. (2007). Mor Perikarp geni ince haritalama ve aday gen analiz Pb pirinçte ( Oryza sativa L.). Çin Bilim. Boğa. 52 3097-3104. 10.1007 / s11434-007-0472-x [ CrossRef ] [ Google Akademik ]
    • Chakuton K., Puangpronpitag D., Nakornriab M. (2012). Renkli ve renksiz Tayland pirinç çeşitlerinin fitokimyasal içeriği ve antioksidan aktivitesi. Asian J. Plant Sci. 6 285-293. 10.3923 / ajps.2012.285.293 [ CrossRef ] [ Google Akademik ]
    • Chandramouli B., Latha MM, Narendra K., Mallikarjuna K. (2018). Eski bir palmiye yaprağı el yazmasında (Talapatra) belirtilen pirinç kabuğunun (Oryza sativa) metanolik özü ve etil asetat özütünün fitokimyasal ve antimikrobiyal araştırmaları. Dünya J. Pharm. Res. 7 598-616. 10.20959 / wjpr20183-10797 [ CrossRef ] [ Google Akademik ]
    • Chen L., Huang Y., Xu M., Cheng Z., Zhang D., Zheng J. (2016). Siyah pirinç tanesi gelişiminin iTRAQ tabanlı kantitatif proteomik analizi, antosiyanin biyosentezi ile ilişkili metabolik yolları ortaya çıkarır. PLOS One 11 : e0159238 . 10.1371 / journal.pone.0159238 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Chen L., Huang Y., Xu M., Cheng Z., Zheng J. (2017). Proteomik analiz, siyah pirinç yaprağında sinyal iletimi ve şeker metabolizması yoluyla antosiyanin biyosentezinin koordineli düzenlenmesini ortaya koymaktadır. Int. J. Mol. Sci. 18 : E2722 . 10.3390 / ijms18122722 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Chen X., Itani T., Wu X., Chikawa Y., Irifune K. (2013). Farklı pirinç çeşitlerinde flavonoid biyosentetik yola dahil olan genlerin transkripsiyonunu etkileyen fizyolojik faktörler. Bitki Sinyali. Behav. 8 : e27555 . 10.4161 / psb.27555 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Cheng A., Han X., Wu Y., Lou H. (2014). Bitki flavonoid biyosentezinde yer alan 2-oksoglutarata bağlı oksijenazların fonksiyonu ve katalizi. Int. J. Mol. Sci. 15 1080-1095. 10.3390 / ijms15011080 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Chiou SY, Lai J.-Y., Liao J.-A., Sung J.-M., Lin S.-D. (2018). Kırmızı perikarp pirinç mutantının yağsız pirinç kepeği özleri ile lipaz, a-amilaz, a-glukosidaz ve anjiyotensin dönüştürücü enzimin in vitro inhibisyonu. Tahıl Chem. 95 167-176. 10.1002 / cche.10025 [ CrossRef ] [ Google Akademik ]
    • Chunta S., Prathepha P., Jongdee B. (2014). Kuzeydoğu Tayland'da bir tarım topluluğu tarafından pirinç tarlalarının kullanımında geleneksel bilgi nüansları. Indian J. Tradit. Knowl. 13 473-483. [ Google Akademik ]
    • Das DK, Oudhia P. (2000). Pirinç Chhattisgarh, Hindistan tıbbi bir bitki olarak. NBPGR Newsl. 122 : 46 . [ Google Akademik ]
    • de Guzman MK, Parween S., Butardo VM, Alhambra CM, Anacleto R., Seiler C., vd. (2017). Tohum çimlenmesi sırasında olgun tahıl ve nişasta mobilizasyon modellerindeki bileşimsel varyasyonları çözerek pirincin glisemik potansiyelinin araştırılması. Sci. Rep. 7 : 5854 . 10.1038 / s41598-017-06026-0 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Dong Y., Xu J., Xiao K., Zhang Y., Zhang J., Luo L., vd. (2008). Pirincin perikarpında ( Oryza sativa L.) kırmızı renklenme derecesi ile ilişkili genomik bölgeler . J. Cereal Sci. 48 556-560. 10.1016 / j.jcs.2007.11.011 [ CrossRef ] [ Google Akademik ]
    • Du Y., Chu H., Chu IK, Lo C. (2010). CYP93G2 Pirinçte c-glikosilflavon biyosentezi için gerekli olan bir flavanon 2-hidroksilazdır. Bitki Physiol. 154 324-333. 10.1104 / pp.110.161042 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Ferrari B., Gianinetti A., Finocchiaro F., Terzi V. (2015). Kırmızı çekirdek pirinçte Rc gen dizisi ve ekspresyon değerlendirmesi. J. Rice Res. 3 : 145 . 10.4172 / 2375-4338.1000145 [ CrossRef ] [ Google Akademik ]
    • Frank T., Reichardt B., Shu Q., Engel K.-H. (2012). Renkli pirinç ( Oryza sativa L.) tanelerinin metabolit profili . J. Cereal Sci. 55 112–119. 10.1016 / j.jcs.2011.09.009 [ CrossRef ] [ Google Akademik ]
    • Furukawa T., Maekawa M., Oki T., Suda I., Iida S., Shimada H., et al. (2006). Re ve Rd genleri pirinç perikarp sentezini proantosiyanidin katılmaktadırlar. Plant J. 49 91-102. 10.1111 / j.1365-313X.2006.02958.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Gallage NJ, Møller BL (2015). En popüler bitki lezzetinin vanilin-biyo-dönüşüm ve biyomühendisliği ve vanilya orkide içindeki de novo biyosentezi. Mol. Bitki 8 40–57. 10.1016 / j.molp.2014.11.008 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Galland M., Boutet-Mercey S., Lounifi I., Balzergue S., Grandjean O., Morin H., et al. (2014). Kuru ve çimlenmiş pirinç tohumlarında flavon metabolizmasının bölme ve dinamiği. Bitki Hücresi Physiol. 55 1646-1659. 10.1093 / pcp / pcu095 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Gene Discovery Rice ve Pirinç Bilim Merkezi (2017). Riceberry. Çevrimiçi olarak şu adreste bulunabilir: http://dna.kps.ku.ac.th/index.php/ne...eberry-variety (erişim tarihi : 13 Mayıs 2019) [ Google Akademik ]
    • Ghasemzadeh A., Kerbelaii MT, Jaafar HZE, Rahmat A. (2018). Siyah, kırmızı ve kahverengi pirinç kepekinin fitokimyasal bileşenleri, antioksidan aktivitesi ve antiproliferatif özellikleri. Chem. Cent. J. 12 : 17 . 10.1186 / s13065-018-0382-9 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Gong L., Chen W., Gao Y., Liu X., Zhang H., Xu C., vd. (2013). Pirinç popülasyonu kullanılarak örneklendirilen metabolomun genetik analizi. Proc. Natl. Acad. Sci. ABD 110 20320-20325. 10.1073 / pnas.1319681110 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Brüt BL, Steffen FT, Olsen KM (2010). Afrika'da evcilleştirilmiş pirinçte beyaz perikarpların moleküler temeli: Rc geninde yeni mutasyonlar . J. Evol. Biol. 23 2747-2753. 10.1109 / TMI.2012.2196707 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Gunaratne A., Wu K., Li D., Bentota A., Corke H., Cai Y. (2013). Proantosiyanidin içeren geleneksel kırmızı taneli pirinç çeşitlerinin antioksidan aktivitesi ve beslenme kalitesi. Food Chem. 138 1153-1161. 10.1016 / j.foodchem.2012.11.129 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Ham T., Kwon SW, Ryu S., Koh H. (2015). Ayrık popülasyonda pirinç tanesinin tane rengi ile siyanidin-3-glukozit içeriği arasındaki korelasyon analizi. Bitki ırkı. Biotechnol. 3 160-166. 10.9787 / pbb.2015.3.2.160 [ CrossRef ] [ Google Akademik ]
    • Han YY, Wang JW, Han N., Liu QJ, Liu TM, Guan FM, vd. (2009). Pirinç kalkon sintaz genlerinin çoğaltılması ve sekans ıraksaması. Russ. J. Plant Physiol. 56 417–422. 10.1134 / s1021443709030169 [ CrossRef ] [ Google Akademik ]
    • Hashmi MI, Tianlin JS (2016). Sabah Malezya'nın bazı yerli pirinç çeşitlerinin mineral içerikleri. Int. J. Agric. İçin. Bitki. 2 31-34. [ Google Akademik ]
    • Hedge S., Yenagi NB, Kasturiba B. (2013). Geleneksel ve nitelikli ayurveda pratisyenlerinin kırmızı pirincin ilaçlarda besinsel önemi ve kullanımı hakkında yerli bilgisi. Indian J. Tradit. Knowl. 12 506-511. [ Google Akademik ]
    • Hemamalini S., Umamaheswari DS, Lavanya DR, Umamaheswara RDC (2018). Tamil Nadu'nun 'Karuppu Kavuni' çeşit pirincinin terapötik potansiyelini ve besinsel özelliklerini araştırmak. Int. J. Pharma Bio Sci. 9 88-96. [ Google Akademik ]
    • Hu J., Anderson B., Wessler SR (1996). Pirinç R genlerinin izolasyonu ve karakterizasyonu : pirinç ve mısırdaki farklı evrimsel yolların kanıtı. Genetik 142 1021-1031. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    • Huang YP, Lai HM (2016). Renkli pirinç kepeklerinin biyoaktif bileşikleri ve antioksidatif aktiviteleri. J. Food Drug Anal. 24 564-574. 10.1016 / j.jfda.2016.01.004 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Hurtada WA, Barrion ASA, Nguyen-Orca MFR (2018). Filipinler'de kurutulmuş ve iyi öğütülmüş pigmentli ve pigmentsiz pirinç çeşitlerinin mineral içeriği. Int. Gıda Arş. J. 25 2063-2067. [ Google Akademik ]
    • Insuan O., Chariyakornkul A., Rungrote Y., Wongpoomchai R. (2017). Tayland pirinç bransının antimutajenik ve antioksidan aktiviteleri. J. Cancer Önceki. 22 89-97. 10.15430 / jcp.2017.22.2.89 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Irakli MN, Samanidou VF, Katsantonis DN, Billiaderis CG, Papadoyannis IN (2016). Pirincin pigmentli ve pigmentsiz genotiplerinin fitokimyasal profilleri ve antioksidan kapasitesi ( Oryza sativa L.). Tahıl Arş. Commun. 44 98-110. 10.1556 / 0806.43.2015.033 [ CrossRef ] [ Google Akademik ]
    • İslam MZ, Khalequzzaman M., Prens MFRK, Siddique MA, Rashid ESMH, Ahmed MSU, et al. (2018). Bangladeş'te kırmızı pirinç germplazm çeşitliliği ve nüfus yapısı. PLOS One 13 : e0196096 . 10.1371 / journal.pone.0196096 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Jesch ED, Carr TP (2017). Kolesterol emilimini engelleyen gıda bileşenleri. Önceki. Nutr. Gıda Sci. 22 67-80. 10.3746 / pnf.2017.22.2.67 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Kang M.-Y., Kim J.-H., Rico CW, Nam S.-H. (2011). Siyah pirinç çeşitlerinin fizikokimyasal özellikleri üzerine karşılaştırmalı bir çalışma. Int. J. Gıda Maddeleri 14 1241-1254. 10.1080 / 10942911003637350 [ CrossRef ] [ Google Akademik ]
    • Khatri (2018). Halk Sağlığı İçin Yerli Bilginin Korunması Gül. Çevrimiçi olarak şu adreste bulunabilir: https://www.ghwatch.org/sites/www.gh.../indig_kph.pdf (erişim tarihi : 13 Mayıs 2019). [ Google Akademik ]
    • Kim C., Cho M., Choi Y., Kim J. (2011). Siyah pirinçte antosiyanin biyosentezini düzenleyen tohuma özgü transkripsiyon faktörlerinin tanımlanması ve karakterizasyonu. J. Appl. Genet. 52 161-169. 10.1007 / s13353-011-0027-3 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Kim CK, Seol YJ, Shin Y., Lim HM, Lee GS, Kim AR, vd. (2015). Süs pirinç bitkilerinde yaprak rengi çeşitliliğinde yer alan genleri tanımlamak için tüm genom yeniden sonuçlandırma ve transkriptomik analiz. PLOS One 10 : e0124071 . 10.1371 / journal.pone.0124071 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Kim DH, Park S., Lee JY, Ha SH, Lee JG, Lim SH (2018). Bir pirinç B-Box proteini, OsBBX14, pirinçteki antosiyanin biyosentezini hassas bir şekilde düzenler. Int. J. Mol. Sci. 9 : E2190 . 10.3390 / ijms19082190 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Kim GR, Jung ES, Lee S., Lim S., Ha S., Lee CH (2014). Farklı pigmentli pirinç ( Oryza sativa L.) tohumlarının kombine kütle spektrometrisi bazlı metabolit profili ve antioksidan aktivitelerle korelasyonu. Moleküller 19 15673–15686. 10.3390 / moleküller191015673 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Kim JH, Lee YJ, Kim BG, Lim Y., Ahn J.-H. (2008). Pirincin Flavanon 3-hidroksilazları: favonol ve antosiyanin biyosentezi için anahtar enzimler. Mol. Hücreler 25 312-316. [ PubMed ] [ Google Akademik ]
    • Ko JH, Kim BG, Hur HG, Lim Y., Ahn JH (2006). Pirinçten bir glikosiltransferazın moleküler klonlanması, ekspresyonu ve karakterizasyonu. Plant Cell Rep. 25 741-746. 10.1007 / s00299-006-0119-4 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Korte A., Farlow A. (2013). GWAS® ile özellik analizinin avantajları ve sınırlamaları: bir gözden geçirme. Bitki Yöntemleri 9 : 29 . 10.1186 / 1746-4811-9-29 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Krishnanunni K., Ramaiah S., Anbarasu A. (2014). İki tıbbi pirinç çeşidinin - Karungkavuni ve Kuzhiadichan - toplam fenolik içeriği ve “in vitro” antioksidan analizi. Int. J. Pharma Bio Sci. 5 540-548. 10.1007 / s13197-014-1292-z [ CrossRef ] [ Google Akademik ]
    • Lachagari VBR, Gupta R., Lekkala SP, Mahadevan L., Kuriakose B., Chakravartty N., vd. (2019). Tüm genom dizileme ve karşılaştırmalı genomik analiz, mor renkli pirinç landrace'e ( Oryza sativa ssp. Indica cv. Purpleputtu) özgü alelik varyasyonları ortaya çıkarır . Ön. Plant Sci. 10 : 513 . 10.3389 / fpls.2019.00513 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Lee J., Seol Y., Hahn J., Won S., Won Y., Kim Y., vd. (2015). Siyah pirinçte antosiyanin üretimini düzenleyen genlerin transkriptomik analizleri. BioChip J. 9 59-66. 10.1007 / s13206-014-9108-9 [ CrossRef ] [ Google Akademik ]
    • Lim SH, Ha SH (2013). Pirinç tohumu renginin tanımlanması için markör gelişimi. Bitki Biyoteknol. Rep. 7 391-398. 10.1007 / s11816-013-0276-1 [ CrossRef ] [ Google Akademik ]
    • Liu Q., Luo L., Zheng L. (2018). Linyinler: Bitkilerde biyosentez ve biyolojik fonksiyonlar. Int. J. Mol. Sci. 19 : E335 . 10.3390 / ijms19020335 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Luo LP, Han B., Yu XP, Chen XY, Zhou J., Chen W., vd. (2014). Siyah pirinç antosiyaninlerinin meme kanserine karşı anti-metastaz aktivitesi: ErbB2 pozitif meme kanseri hücre hattı ve tümöral ksenograft modeli kullanılarak analizler. Asya Pasifik J. Cancer Prev. 15 6219-6225. 10.7314 / APJCP.2014.15.15.6219 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Ma Y., Id HD, Zhang F., Li Y., Yang H., Tian F.-P., vd. (2018). Lycium ruthenicum Murr'un transkriptomik analizi . meyve olgunlaşması sırasında antosiyanin biyosentetik yolağındaki yapısal ve düzenleyici genler hakkında fikir verir. PLOS One 13 : e0208627 . 10.1371 / journal.pone.0208627 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Maeda H., Yamaguchi T., Omoteno M., Takarada T., Fujita K., Murata K., vd. (2014). İzojenik bir çizginin gelişmesiyle siyah taneli pirincin genetik diseksiyonu. Doğurmak. Sci. 64 134-141. 10.1270 / jsbbs.64.134 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Matsuda F., Nakabayashi R., Yang Z., Okazaki Y., Yonemaru JI, Ebana K., vd. (2015). Metabolom-genom-geniş birliktelik çalışması, pirinç sekonder metabolizmasında doğal varyasyon üretmek için genetik mimariyi incelemektedir. Plant J. 81 13-23. 10.1111 / tpj.12681 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Matsuda F., Okazaki Y., Oikawa A., Kusano M., Nakabayashi R., Kikuchi J., et al. (2012). Pirinç tanelerinde genotip - fenotip ilişkilerinin metabolom kantitatif özellik lokus analizi kullanılarak diseksiyonu. Plant J. 70 624-636. 10.1111 / j.1365-313X.2012.04903.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Matsukawa T., Villareal MO, Isoda H. (2016). Siyanidin-3-glukozidin adipositler üzerinde Tip 2 diyabet önleyici etkisi. J. Dev. Sürdürmek. Agric. 11 31-35. [ Google Akademik ]
    • Melini V., Acquistucci R. (2017). Pigmentli Tay ve yabani pirinçte sağlığı geliştiren bileşikler. Gıdalar 6 : E9 . 10.3390 / foods6010009 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Merchante C., Stepanova AN, Alonso JM (2017). Bitkilerde çeviri düzenlemesi: ilginç bir geçmiş, heyecan verici bir hediye ve gelecek vaat eden bir gelecek. Plant J. 90 628-653. 10.1111 / tpj.13520 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Nigatu G., Hansen J., Childs N., Seeley R. (2017). Sahra-altı Afrika'nın Küresel Pirinç İthalatının Önemli Noktalarında Lider Olması Beklenmektedir. Çevrimiçi olarak şu adresten ulaşılabilir : https://ideas.repec.org/a/ags/uersaw/266026.html (erişim tarihi 13 Mayıs 2019). [ Google Akademik ]
    • Oh HJ, Lee Y.-J., Byeon E.-J., Kang B.-C., Kyeong D.-S., Kim C.-K. (2018). Siyah pirinç bitkilerinde antosiyanin biyosentezini düzenleyen genlerin tüm genom yeniden sonuçlandırılması ve transkriptomik analizi. 3 Biyoteknoloji 8 : 115 . [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    • Oikawa T., Maeda H., Oguchi T., Yamaguchi T., Tanabe N., Ebana K., vd. (2015). Siyah pirinç geninin doğuşu ve introgresyon ile lokal yayılımı. Bitki Hücresi 27 2401-2414. 10.1105 / tpc.15.00310 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Park S., Choi MJ, Lee JY, Kim JK, Ha SH, Lim SH (2016). Pirinç tanesinde flavonoid biyosentezindeki rollerini değerlendirmek için iki pirinç flavonoid 3'-hidroksilazın moleküler ve biyokimyasal analizi. Int. J. Mol. Sci. 17 1549–1562. 10.3390 / ijms17091549 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Pereira-Caro G., Watanabe S., Crozier A., ​​Fujimura T., Yokota T. (2013). Japon siyah - mor pirincin fitokimyasal profili. Food Chem. 141 2821–2827. 10.1016 / j.foodchem.2013.05.100 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Petroni K., Landoni M., Tomay F., Calvenzani V. (2017). Beyaz ve pigmentli İtalyan pirinç çeşitlerinin yaklaşık kompozisyonu, polifenol içeriği ve antienflamatuar özellikleri. Üniv. J. Agric. Res. 5 312-321. 10.13189 / ujar.2017.050509 [ CrossRef ] [ Google Akademik ]
    • Pintha K., Yodkeeree S., Pitchakarn P., Limtrakul P. (2014). Kırmızı yasemin pirincindeki ( Oryza sativa L.) fitokimyasalların kanser hücrelerine karşı anti-invaziv aktivite . Asya Pasifik J. Cancer Prev. 15 4601-4607. 10.7314 / apjcp.2014.15.11.4601 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Poulev A., Heckman JR, Raskin I., Belanger FC (2019). Tricin seviyeleri ve mor ve kahverengi perikarp pirinç tanelerinin gelişmesinde flavonoid biyosentetik genlerin ekspresyonu. PeerJ 7 : e6477 . 10.7717 / peerj.6477 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Qualley AV, Widhalm JR, Adebesin F., Kish CM, Dudareva N. (2012). Bitkilerde benzoik asit biyosentezinin çekirdek-oksidatif yolunun tamamlanması. Proc. Natl. Acad. Sci. ABD 109 16383-16388. 10.1073 / pnas.1211001109 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Rachasima LN, Sukkasem R., Pongjaroenkit S., Sangtong V., Chowpongpang S., Sakulsingharoj C. (2017). Tay pirinç çeşitlerinde antosiyanin pigmentasyonu ile ilişkili OsC1 geninin ekspresyon analizi ve nükleotid varyasyonu . Genomics Genet. 10 46-53. [ Google Akademik ]
    • Raghuvanshi RS, Dutta A., Tewari G., Suri S. (2017). Uttarakhand yerel pazarından elde edilen kırmızı pirinç ve beyaz pirincin kalitatif özellikleri: karşılaştırmalı bir çalışma. J. Rice Res. 10 49–53. [ Google Akademik ]
    • Rahman MM, Lee KE, Lee ES, Matin MN, Lee DS, Yun JS, vd. (2013). Tamamlayıcı Pp ve Pb genlerinin genetik yapıları, siyah pirinçte siyanidin-3-O-glukozit birikintileri ile perikarplardaki mor renk varyasyonunu belirler. J. Plant Biol. 56 24–31. 10.1007 / s12374-012-0043-9 [ CrossRef ] [ Google Akademik ]
    • Rahman S., Sharma MP, Sahai S. (2006). Bazı yerli pirinç çeşitlerinin beslenme ve tıbbi değerleri. Indian J. Tradit. Knowl. 5 454-458. [ Google Akademik ]
    • Rao Y., Li Y., Qian Q. (2014). Çin'de pirincin moleküler ıslahında son gelişmeler. Plant Cell Rep. 33 551-564. 10.1007 / s00299-013-1551-x [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Roberts JE, Dennison J. (2015). Gözdeki lutein ve zeaksantin fotobiyolojisi. J. Ophtalmol. 2015 : 687173 . 10.1155 / 2015/687173 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Rysbekova AB, Kazkeyev DT, Usenbekov BN, Mukhina ZM, Zhanbyrbaev EA, Sartbaeva IA, et al. (2017). Genotipleme Rc ve Pb genlerine dayanan renkli perikarp ile pirinç seçimi. Russ. J. Genet. 53 49–58. 10.1134 / s1022795416110119 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Saitoh K., Onishi K., Mikami I., Thidar K., Sano Y. (2004). Yabani ve ekili pirincin C ( OsC1 ) lokusunda alelik çeşitlendirme : fenotiplerle ilişkili nükleotit değişiklikleri. Genetik 168 997–1007. 10.1534 / genetics.103.018390 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sakamoto W., Ohmori T., Kageyama K., Miyazaki C., Saito A., Noda K., vd. (2001). Mor yaprak ( Pl ) Pirinç Lokasyonu ?: Plw aleli karmaşık bir organizasyona sahiptir ve antosiyanin biyosentezinde yer alan temel sarmal-döngü-sarmal proteinlerini kodlayan iki gen içerir. Bitki Hücresi Physiol. 42 982-991. 10.1093 / pcp / pce128 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sakulsingharoj C., Inta P., Sukkasem R., Pongjaroenkit S., Chowpongpang S., Sangtong V. (2014). Transgenik pirinçte OSB2 geninin aşırı ekspresyonu, antosiyanin biyosentez yolağındaki yapısal genlerin yukarı regüle edilmiş ekspresyonu. Thai J. Genet. 7 173-182. 10.14456 / tjg.2014.24 [ CrossRef ] [ Google Akademik ]
    • Sakulsingharoj C., Inta P., Sukkasem R., Pongjaroenkit S., Chowpongpang S., Sangtong V. (2016). Tay siyah pirinçten antosiyanin biyosentezini kontrol eden OSB1 geninin klonlanması ve karakterizasyonu . Genomics Genet. 9 7-18. 10.14456 / gag.2016.2 [ CrossRef ] [ Google Akademik ]
    • Saneei P., Larijani B., Esmaillzadeh A. (2016). Pirinç tüketimi, kronik hastalık insidansı ve mortalite riski?: Kohort çalışmalarının meta-analizi. Halk Sağlığı Nutr. 20 233–244. 10.1017 / S1368980016002172 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Santos-Sánchez NF, Salas-Coronado R., Hernández-Carlos B., Villanueva-Cañongo C. (2019). “ Fenolik bileşiklerin biyosentezine Şikimik asit yolu içinde,” Fenolik Bileşiklerin Bitki fizyolojik yönden (: IntechOpen London), 10,5772 / intechopen.83815 [Soto-Hernandez M., Garcia-Mateos R., Palma-Tenango M. Eds CrossRef ] [ Google Akademik ]
    • Sarma R., Swamy HVVK, Shashidhar HE (2018). Pirinçte çinko ve demir eksikliği ile başa çıkmak ?: gelişmekte olan ülkelerde gizli açlıkla mücadele stratejilerini birleştirin. Int. J. Curr. Microbiol. Baş. Sci. 7 1887-1895. 10.20546 / ijcmas.2018.703.224 [ CrossRef ] [ Google Akademik ]
    • Sasaki N., Nishizaki Y., Ozeki Y., Miyahara T. (2014). Antosiyanin modifikasyonlarında asil-glikozun rolü. Moleküller 19 18747-18766. 10.3390 / moleküller191118747 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sathya A. (2013). Hint pirinç tarlaları geçmişlerini hatırlamak veya gelecek için yeniden icat etmek için bir biyolojik çeşitlilik mirası mı? Asya Agrihist. 17 221-232. [ Google Akademik ]
    • Shao Y., Hu Z., Yu Y., Mou R., Zhu Z., Beta T. (2018). Fenolik asitler, antosiyanis, proantosiyanidinler, antioksidan aktivite, mineraller ve pigmentsiz, kırmızı ve siyah pirinçte korelasyonları. Food Chem. 239 733-741. 10.1016 / j.foodchem.2017.07.009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Shao Y., Jin L., Zhang G., Lu Y., Shen Y., Bao J. (2011). Kurutulmuş pirinçte tane rengi, fenolik içerik, flavonoid içeriği ve antioksidan kapasitenin birlikteliği. Theor. Baş. Genet. 122 1005-1016. 10.1007 / s00122-010-1505-4 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sharma A., Patni B., Shankhdhar D., Shankhdhar SC (2013). Çinko - vazgeçilmez bir mikro besin. Physiol. Mol. Biol. Bitkiler 19 11-20. 10.1007 / s12298-012-0139-1 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Shih CH, Chu H., Tang LK, Sakamoto W., Maekawa M., Chu IK, vd. (2008). Pirinç flavonoid biyosentezinde anahtar yapısal genlerin fonksiyonel karakterizasyonu. Planta 228 1043-1054. 10.1007 / s00425-008-0806-1 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Shozib HB, Jahan S., Das SC, Alam S., Amin RB, Hasan M., vd. (2017). Bangladeş'te HYV pirinç mineral profilleme. Vitam. Madenci. 6 : 164 10.4172 / 2376-1318.1000164 [ CrossRef ] [ Google Akademik ]
    • Spoel SH (2018). Çeviri sonrası değişiklikler ile proteom düzenlenmesi. J. Exp. Bot. 69 4499–4503. 10.1093 / jxb / ery295 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sun X., Zhang Z., Chen C., Wu W., Ren N., Jiang C., vd. (2018). C – S – A gen sistemi gövde pigmentasyonunu düzenler ve pirinçte antosiyanin biyosentez yolunun evrimini ortaya koyar. J. Exp. Bot. 69 1485-1498. 10.1093 / jxb / ery001 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Suttiarporn P., Chumpolsri W., Mahatheeranont S., Luangkamin S., Teepsawang S., Leardkamolkarn V. (2015). Siyah yapışkan olmayan pirincin kepeklerinde potansiyel anti-kanser aktivitesine sahip fitosterollerin ve triterpenoidlerin yapıları. Besin maddeleri 7 1672-1687. 10.3390 / nu7031672 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Suwannakul N., Punvittayagul C., Jarukamjorn K., Wongpoomchai R. (2015). Mor pirinç kepeği ekstresi, ksenobiyotik metabolize edici enzimlerin değiştirilmesiyle hepatokarsinogenezin aflatoksin B1 ile indüklenen başlatma aşamasını zayıflatır. Asya Pasifik J. Cancer Prev. 16 3371-3376. 10.7314 / APJCP.2015.16.8.3371 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sweeney MT, Thomson MJ, Cho YG, Park YJ, Williamson SH, Bustamante CD, et al. (2007). Pirinçte beyaz perikarp veren tek bir mutasyonun küresel yayılması. PLoS Genet. 3 : e133 . 10.1371 / journal.pgen.0030133 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Sweeney MT, Thomson MJ, Pfeil BE, Mccouch S. (2006). Kırmızı elini yakaladı mı ?: Rc , pirinçte temel bir sarmal-döngü-sarmal protein koşullandırma kırmızı perikarp kodlar. Bitki Hücresi 18 283-294. 10.1105 / tpc.105.038430.1 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Tan YF, Sun M., Xing YZ, Hua JP, Sun XL, Zhang QF, et al. (2001). Elit bir pirinç hibridinden türetilmiş rekombinant inbred bir çizgi popülasyonu kullanılarak pirincin kalitesi, protein içeriği ve renk özellikleri için nicel özellik lokuslarının haritalanması. Theor. Baş. Genet. 103 1037-1045. 10.1007 / s001220100665 [ CrossRef ] [ Google Akademik ]
    • Tantipaiboonwong P., Pintha K., Chaiwangyen W., Chewonarin T., Pangjit K., Chumphukam O., vd. (2017). Streptozotosin kaynaklı diyabetik sıçanlarda siyah ve kırmızı pirincin anti-hiperglisemik ve anti-hiperlipidemik etkileri. ScienceAsia 43 281-288. [ Google Akademik ]
    • Teng S., Keurentjes J., Bentsink L., Koornneef M., Smeekens S. (2005). Arabidopsiste sükroza özgü antosiyanin biyosentezinin başlatılması için MYB75 / PAP1 geni gerekir. Bitki Physiol. 139 1840-1852. 10.1104 / pp.105.066688.1840 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Terungwa TI, Yuguda MA (2014). Nijerya'da pirinç üretimi, tüketimi ve ithalatının etkisi: politik ekonomi perspektifleri. Int. J. Sustain. Dev. Dünya Politikası 3 90-99. [ Google Akademik ]
    • Thomas R., Bhat R., Kuang YT (2015). Malezya'nın bazı yerli ve ithal pirinç çeşitlerinde amino asitler, yağ asitleri, mineraller ve diyet lifi bileşimi. Int. Gıda Arş. J. 22 1148-1155. [ Google Akademik ]
    • Tzin V., Galili G. (2010). Bitkilerdeki parlak ve aromatik amino asitler biyosentez yollarına yeni bakışlar. Mol. Plant 3 956-972. 10.1093 / mp / ssq048 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Umadevi M., Pushpa R., Sampathkumar KP, Bhowmik D. (2012). Hindistan'da pirinç-geleneksel tıbbi bitki. J. Pharmacogn. Phytochem. 1 6–12. [ Google Akademik ]
    • Valarmathi R., Raveendran M., Senthil N. (2014). 'Kavuni'nin geleneksel Tamil Nadu pirinç çeşidinin besleyici ve terapötik özelliklerini çözmek. J. Plant Biochem. Biotechnol. 24 305-315. 10.1007 / s13562-014-0274-6 [ CrossRef ] [ Google Akademik ]
    • Verma DK, Shukla K. (2011). Pirincin besin değeri ve önemi. Hint çiftçiler kazmak. 44 21-35. [ Google Akademik ]
    • Vichit W., Saewan N. (2015). Tay pigmentli pirincin antioksidan aktiviteleri ve sitotoksisitesi. Int. J. Pharm. Pharm. Sci. 7 329-334. [ Google Akademik ]
    • Voss-Fels KP, Stahl A., Hickey LT (2019). Soru ve Cevap: gelecekteki gıda güvenliği için modern mahsul yetiştiriciliği. BMC Biol. 17 : 18 . [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    • Wahyuni ​​AS, Munawaroh R., Da'i M. (2016). Diyabetik sıçanlar üzerinde siyah pirinç kepeği etanol ekstraktının antidiyabetik mekanizması. Natl. J. Physiol. Pharm. Pharmacol. 6 106-110. 10.5455 / njppp.2015.5.1111201590 [ CrossRef ] [ Google Akademik ]
    • Waiyawuththanapoom P., Waiyawuththanapoom W., Tirastittam P. (2015). Tayland Rice Berry Ürünü için bir kanal olarak sosyal medya. Int. J. Econ. Yön. Müh. 9 904-907. [ Google Akademik ]
    • Wambugu P., Ndjiondjop M., Furtado A., Henry R. (2018). Segregan yığınlarının dizilimi, pirinçteki amiloz içeriğinin genetik kontrolünün diseksiyonuna izin verir. Bitki Biyoteknol. J. 16 100-110. 10.1111 / pbi.12752 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Wang H., Xu X., Vieira FG, Xiao Y., Li Z., Wang J., vd. (2016). Akrabalı yetiştirmenin gücü: Pirinç NGS tabanlı GWAS, pirinç evcilleştirme sırasında yakınsak evrimi ortaya çıkarır. Mol. Plant 9 975-985. 10.1016 / j.molp.2016.04.018 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Wickert E., Schiocchet MA, Noldin JA, Raimondi JV, De Andrade A., Scheuermann KK, et al. (2014). Değişkenliği keşfetmek mi istiyorsunuz?: Özel rices piyasası için yeni Brezilya SCS119 Rubi ve SCS120 Onix çeşitleri. J. Genet'i açın. 4 157-165. 10.4236 / ojgen.2014.42016 [ CrossRef ] [ Google Akademik ]
    • Widhalm JR, Dudareva N. (2015). Tanıdık bir halka: Bitki benzoik asitlerin biyosentezi. Mol. Bitki 8 83-97. 10.1016 / j.molp.2014.12.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Dünya Pirinç Üretimi (2019). Dünya Pirinç Üretimi 2019/2020. Çevrimiçi olarak şu adreste bulunabilir: http://www.worldagriculturalproducti...ops/rice.aspx/ (erişim tarihi : 17 Mayıs 2019). [ Google Akademik ]
    • Xiongsiyee V., Rerkasem B., Veeradittakit J., Saenchai C., Lordkaew S., Prom-U-Thai CT (2018). Laang PDR, Luang Prabang eyaletinden yayla pirincinin tane kalitesinde değişim. Rice Sci. 25 94-102. 10.1016 / j.rsci.2018.02.002 [ CrossRef ] [ Google Akademik ]
    • Xu TY, Sun J., Chang HL, Zheng HL, Wang JG, Liu HL, vd. (2017). Kırmızı pirinçte antosiyanin ve proantosiyanidin içeriği için QTL haritalaması. Euphytica 213 : 243 . [ Google Akademik ]
    • Xu W., Grain D., Bobet S., Le Gourrierec J., Thevenin J., Kelemen Z., vd. (2013). MYB - bHLH - WDR komplekslerinin ve Arabidopsis tohumundaki hedeflerinin kapsamlı analizleri ile ortaya çıkan flavonoid transkripsiyonel düzenleyici ağın karmaşıklığı ve sağlamlığı. Yeni Phytol. 202 132-144. 10.1111 / nph.12620 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Yang X., Xia X., Zeng Y., Nong B., Zhang Z., Wu Y., vd. (2018). Jelatinleşme sıcaklığı, jel kıvamı ve perikarp rengi için aday genlerin pirinçte GWAS tarafından SLAF sekanslaması temelinde tanımlanması. PLoS Genet. 13 : e0196690 . 10.1371 / journal.pone.0196690 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Yoshimura Y., Zaima N., Moriyama T., Kawamura Y. (2012). Siyah pirinç perikarpında antosiyanin türlerinin farklı lokalizasyon paternleri, kitle spektrometrisinin görüntülenmesiyle ortaya çıkar. PLOS One 7 : e31285 . 10.1371 / journal.pone.0031285 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Zhang H., Shao Y., Bao J., Beta T. (2015). Beyaz ve siyah pirinç arasındaki üreme hatlarının fenolik bileşikleri ve antioksidan özellikleri. Food Chem. 172 630-639. 10.1016 / j.foodchem.2014.09.118 [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Zhang L., Dong Y., Wang Q., Du C., Xiong W., Li X., vd. (2017). Mısır'da çekirdek dokusu gelişimi için iTRAQ tabanlı proteomik analizi ve ağ entegrasyonu. Mol. Sci. 18 : 1840 . 10.3390 / ijms18091840 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Zhang Y., Xu S., Cheng Y., Peng Z. (2018). Antosiyaninle ilişkili genlerin transkriptom profili, kırmızı yaprak marulunda ışık yoğunluğunun antosiyanin biyosentezi üzerine etkilerini ortaya çıkarır. PeerJ 6 : e4607 . 10.7717 / peerj.4607 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Zhao J., Pang Y., Dixon RA (2010). Proantosiyanidin taşıma ve polimerizasyon gizemleri. Bitki Physiol. 153 437-443. 10.1104 / pp.110.155432 [ PMC içermeyen makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    • Zubair M., Anwar F., Ashraf M., Uddin K. (2012). Pakistan pirincinin ( Oryza sativa L.) bazı seçilmiş çeşitlerinde yüksek değerli biyoaktiflerin karakterizasyonu . Int. J. Mol. Sci. 13 4608-4622. 10.3390 / ijms13044608 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]

    Yorum yap


    • #3
      Kombine Siyah Pirinç Mikrop, Kepek Takviyesi ve Egzersiz Müdahalesi Yaşlanan Biyobelirteçleri Modüle Eder ve Yaşlanma Popülasyonunda Fiziksel Performansı ve Alt Vücut Kas Gücü Parametrelerini Geliştirir

      ile Mathuramat Seesen 1, †,Warathit Semmarath 2,3, †,Supachai Yodkeeree 2,3Ratana Sapbamrer 1,Pisittawoot Ayood 1,Rungnapa Malasao 1,Krongporn Ongprasert 1,Jiraporn Chittrakul 1,Penprapa Siviroj 1, *vePornngarm Limtrakul (Dejkriengkraikul) 2,3, *
      1
      Chiang Mai Üniversitesi Tıp Fakültesi, Toplum Hekimliği Anabilim Dalı, Chiang Mai 50200, Tayland
      2
      Chiang Mai Üniversitesi Tıp Fakültesi, Biyokimya Anabilim Dalı, Chiang Mai 50200, Tayland
      3
      Sağlık için Doğal Ürün Araştırma ve Geliştirme Merkezi, Chiang Mai Üniversitesi, Chiang Mai 50200, Tayland
      *
      Yazışmanın ele alınması gereken yazarlar.
      †
      Bu yazarlar bu çalışmaya eşit katkıda bulunmuşlardır.
      Int. J. Environ. Res. Halk Sağlığı 2020 , 17 (8), 2931; https://doi.org/10.3390/ijerph17082931
      Gönderim Tarihi: 13 Mart 2020 / Revize: 15 Nisan 2020 / Kabul Tarihi: 20 Nisan 2020 / Yayınlanma: 23 Nisan 2020
      (Bu makale , Yaşlılarda Fiziksel Performans, Biyobelirteçler ve Sağlıklı Yaşlanma Özel Sorununa aittir )
      PDF İndir
      Şekillere Göz At


      Öz
      Yaşlanma, zayıf fiziksel performanslara, hormonal dengesizliğe ve kronik düşük dereceli inflamasyonun gelişimine yansıyan kas kütlesi ve gücünde zamana bağlı fonksiyonel bir düşüştür. Bu çalışma, siyah pirinç tohumu, kepek takviyesi ve egzersiz programının yaşlanma biyobelirteçleri (C-reaktif protein, İnterlökin-6, İnsülin benzeri büyüme faktörü-1 ve CD4) üzerinde 24 hafta boyunca tek başına veya kombinasyon halinde etkinliğini değerlendirmeyi amaçlamıştır. : CD8 T hücre oranı) Tay yaşlanan popülasyonda fiziksel performans, kas gücü parametreleri (yürüme hızı, oturma-bekleme süresi, kavrama gücü). Egzersiz grubuna (EX), siyah pirinç tohumu ve kepek takviyesi (BR) grubuna veya BR ve EX grubunun (BR + EX) kombinasyonuna 65-74 yaş arası toplam 120 sağlıklı gönüllü atandı. 24 haftalık müdahale boyunca, temel verilerle (T0) karşılaştırıldığında,p <0.05'e karşı T0) ve insülin benzeri büyüme faktörü-1 düzeylerini önemli ölçüde artırdı ( p <0.001'e karşı T0). Kombine BR + EX grubunda fiziksel performans ve kas gücünde önemli bir iyileşme gözlendi (her ikisi de p <0.05'e karşı T0 ve 24 haftalık müdahaleye oturma oturumu süresinde azalma ve yürüyüş hızı ve kavrama gücüne eğilim) p = 0.088'de T0'a karşı iyileşme ). Sonuç olarak, sonuçlarımız fiziksel performanslardaki sürdürülebilir iyileşme, düşük vücut kas gücü ve hem inflamatuar hem de endokrin biyobelirteçlerin modülasyonu ile kombine müdahaleye sinerjik bir etki gösterdi. Bu çalışma yaşlı yetişkinleri sağlıklı yaşlanmayı ve uzun ömürlülüğü geliştirmek için yaşam tarzlarını değiştirmeye teşvik edebilir.
      Anahtar Kelimeler: yaşlanma ; müdahale ; siyah pirinç tohumu ve kepeği ; egzersiz ; fiziksel performans ; kas gücü ; iltihaplanma ; biyobelirteçler ; yaşlı yetişkinler ; sağlıklı yaşlanma

      1. Giriş
      İnsan ömründe bir artış ve doğurganlık oranlarındaki düşüş, dünya genelinde yaşlı nüfusta artışa neden olmuştur. 2050 yılına gelindiğinde, yaşlı insan sayısının 2017 yılında dünya nüfusunun iki katından daha fazla olan dünya toplam nüfusunun 2,1 milyarına veya% 22'sine ulaşacağı tahmin ediliyordu. Ayrıca, yaşlı insan sayısının artması bekleniyor. 2050 yılında 15-24 yaş arası insanlardan daha fazla [ 1 ]. Buna paralel olarak, 2005'ten beri yaşlı bir toplum haline gelen Tayland'ın, Güneydoğu Asya'daki yaşlı yetişkinlerin en yüksek ikinci oranına sahip olduğu bildirilmektedir. 2018'de Tayland yaşlılarının oranı% 16.06 idi ve bu oranın 2021'de% 20'ye ulaşacağı tahmin ediliyor [ 2 ].
      İnsan fizyolojik fonksiyonu yaş arttıkça azalır. Boylamsal çalışmalar, yaşlanma ile birlikte, çoğu kişinin “iltihaplanma-yaşlanma” adı verilen kronik düşük dereceli pro-inflamatuar bir durum geliştirdiğini ve böyle bir durumun multimorbidite, fiziksel ve bilişsel sakatlık, kırılganlık ve hatta ölüm için güçlü bir risk faktörü olduğunu göstermiştir. [ 3 , 4 ]. Yaşlanma ayrıca genellikle kişinin yaşamının 5. dekadında ortaya çıkmaya başlayan iskelet kası kitle düşüşü ile de ilişkilidir [ 5]. Kas gücü, fonksiyonel ve denge bozukluğu, sakatlıklar ve daha yüksek düşme riskindeki eksiklikler, yaşlılarda kas kaybının sonucudur. Özellikle yaşlı erişkinlerde kas gücünün azalması sadece fiziksel engellilikle ilgili olmakla kalmaz, aynı zamanda ölüm oranlarını da arttırır [ 6 , 7 , 8 , 9 ].
      Hücrelerarası iletişimin değişmesi (proinflamatuar sitokinlerin dolaşım seviyelerinde bir artışa yol açan doğuştan gelen bağışıklık sistemleri hiperaktivasyonu ve GHRH-GH-IGF-1 ekseni vb. Gibi nörohormonal sinyallemedeki değişiklikler) Yaşlanma sürecinde ortaya çıkan oksidatif hasarın ömür boyu birikmesi ile tetiklendiğine inanılan temel yaşlanma belirtileri [ 10 , 11 , 12 , 13]. Oksidatif stres, kas performansı ve kas kütlesinde daha fazla düşüşe yol açan Reaktif Oksijen Türleri (ROS) üretimi ile ilgili olarak kas kütlesi ve güç kaybı ile ilişkili olduğu bildirilen sitokinlerin salınımının bir amplifikasyonunu ortaya çıkarır. Ayrıca, oksidatif stresin artması, yaşlılarda yürüme hızı gibi fiziksel performanstaki düşüş ile de ilişkilidir [ 14 , 15 , 16 ]. İnflamatuar sitokinlerle ilgili olarak, önceki çalışmamızda yüksek İnterlökin-6 (IL-6) ve C-reaktif protein (CRP) seviyelerinin yaşlı erişkinlerde kavrama kas gücünün azalması için tehlikeli bir oranla ilişkili olduğu bildirilmiştir [ 17]. Ayrıca, zaman içinde yüksek IL-6 seviyeleri, multimorbiditenin gelişmesi ve gelişmesi için potansiyel bir durum olarak kabul edilmektedir [ 18 ]. Ek olarak, insülin benzeri Büyüme Faktörü-1 (IGF-1) hormonal seviyelerindeki dengesizlik gibi yaşlanma sürecinde tipik olarak ortaya çıkan endokrin sistemindeki değişiklikler de kas kütlesindeki hızlandırılmış düşüşte önemli bir faktör olacaktır. ve yaşlılarda güç [ 19 , 20]. Bu nedenle, önceki bulgulara dayanarak, düşük dereceli kronik inflamasyonu hedefleyebilecek ve yaşlanan bireylerde hormonal düzensizliği geri getirebilecek bir müdahale, fiziksel performansların ve kas gücünün iyileştirilmesine ve ayrıca kronik hastalıklar için ilgili risk faktörlerinin azaltılmasına neden olabilir. Özellikle, ikincisi, multimorbidite ve sağlıksız yaşlanmanın önemli bir patolojik süreci olarak kabul edilir.
      Egzersizin daha önce yaşlı erişkinlerde çeşitli iltihap biyobelirteçlerini azalttığı (CRP ve IL-1 bio, IL-6 vb. Gibi sitokinler) ve besin artışı algılama yolunu bir artışla aktive ederek yaşlanmanın ayırt edici özelliklerini modüle ettiği bildirildi. GH ve / veya IGF-1 seviyeleri [ 21 , 22 ]. Ayrıca, kas gücü, fiziksel aktivite ve yaşlılarda düşmeyi önlemek için egzersiz müdahalesi etkili bir yöntem olarak önerilmiştir [ 23 , 24 , 25]. Ayrıca, birçok besin takviyesinin egzersizin yaşlılarda fiziksel performans ve kas gücü üzerindeki etkilerini arttırdığı gösterilmiştir. Bununla birlikte, önceki çalışmalar sadece amino asitler, proteinler ve D vitamini metabolizması üzerindeki olumlu etkilere odaklanmıştır [ 26 , 27 ]. Son yıllarda, yaşlanan bireyler arasındaki klinik müdahalenin amaçları sadece yaşlanan deneklerin fiziksel performanslarını ve kas gücünü hedeflemekle kalmayıp, aynı zamanda iltihaplı yaşlanma fenomenini kronik hastalıkların önleyici bir ölçüsü olarak hedeflemek için tasarlanmıştır. Çinko (Zn), Resveratrol, Epimedium total flavonoidler ve İcariin, yaşlılar için etkili, güvenli ve toksik olmadığı düşünüldüğü için bu amaçla yaygın olarak kullanılan klinik ilaçlardır [28 , 29 , 30 , 31 , 32 , 33 ]. Son zamanlarda, kırmızı pirinç, mor pirinç ve siyah pirinç gibi pigmentli pirinç çeşitleri, fenolikler, flavonoidler, tokollar ve sterol türevleri dahil olmak üzere çeşitli fitokimyasal bileşiklerine daha fazla ilgi göstermiştir. Bu biyoaktif bileşikler öncelikle pirinç tanesi, mikrop ve kepek dış tabakasında bulunur [ 34 , 35 , 36 , 37]. Siyah pirinç tohumu ve brans, siyanidin-3-O-glukozit (C3G) ve peonidin-3-O-glukozit gibi antosiyanin fitokimyasallarının varlığı ile karakterize edilir. Bu fitokimyasalların antioksidan kapasiteleri ve antienflamatuar aktiviteleri nedeniyle rapor edilmiştir [ 38 , 39 , 40 ]. Antosiyanin bakımından zengin siyah pirinç özütünün, bir makrofaj hücre hattı üzerinde yürütülen anti-enflamatuar etkilere sahip olduğu ve lipopolisakkarit (LPS) tedavilerinin neden olduğu enflamatuar yanıtı azalttığı bulunmuştur. Ayrıca mitojenle aktifleştirilen protein kinaz (MAPK) sinyal yolunun inhibisyonu yoluyla pro-enflamatuar sitokinlerin (TNF-a ve IL-6) salgılanmasını mekanik olarak azalttığı da bulunmuştur. Bu NF-κB ve Aktivatör Protein 1'in (AP-1) nükleer translokasyonunda azalmaya neden olabilir [41 , 42 ]. Ek olarak, siyah pirinç ekstraktının anti-enflamatuar etkilerinin, potansiyel olarak ilave veya sinerjistik bir şekilde etki eden antosiyaninlerin yanı sıra ekstraktlarda bulunan diğer bileşiklerle ilişkili olduğuna inanılıyordu. Ayrıca, siyah pirincin iltihap önleyici kapasitesi termal veya pişirme işleminden bağımsız olarak güçlüdür [ 43 , 44 , 45 ].
      Bildiğimiz kadarıyla, takviyelerin etkinliği üzerine, sistemik inflamasyonu azaltmayı ve anabolik hormon seviyelerini fiziksel performans, kas gücü ve kanın iyileştirilmesi için bir egzersiz programı ile birlikte geri yüklemeyi amaçlayan bir çalışma yoktur. yaşlılarda biyolojik yaşlanma temelli. Bu nedenle, bu çalışma, siyah pirinç tohumu ve kepek takviyesi, egzersiz programı ve toplumda yaşayan yaşlılarda çeşitli yaşlanma biyobelirteçleri, fiziksel performans ve kas gücü üzerine kombine bir müdahalenin etkinliğini değerlendirmek için yapılmıştır. Bu, Tayland da dahil olmak üzere birçok gelişmiş ve gelişmekte olan ülkede sağlıklı bir yaşlanma politikası oluşturma hedefine ulaşmak için yapıldı.

      2. Gereç ve Yöntem

      2.1. Çalışma Tasarımı ve Katılımcılar

      Bu prospektif çalışma, katılımcıların işe alınmasından başlayarak müdahale takip aşamasının son zaman noktasına kadar Eylül 2018'den Mayıs 2019'a kadar yürütülmüştür. Katılımcılar Lamphun Eyaleti, Pasang Bölgesi ve Chiang Mai Eyaleti, Khua Mung Bölgesi'nde yaşayan 65-74 yaşları arasındaki toplumda yaşayan yaşlı yetişkinlerdi. Her iki eyalet de Tayland'ın kuzey kesiminde bulunmaktadır. Tayland'ın her bölgesinin yaşlanan nüfusu başına, kuzey bölgesi, ülkede yaşlanan vatandaşların en yüksek oranına sahip olarak kabul edilmektedir. Ayrıca, bu çalışmaya dahil edilen belirli illerin istatistikleri ile ilgili olarak, Chiang Mai Eyaleti şu anda üçüncü en büyük yaşlı nüfusa sahip olarak kabul edilmektedir. Aynı zamanda, Lamphun Eyaletleri kuzey Tayland'daki en yüksek yaşlanma endeksine sahip olarak sıralanmıştır [2 , 46]. Çalışma süresi boyunca çalışma alanında yaşayan ve Tay dili ile iletişim kurabilen yaşlılardan bu çalışmaya katılmaları istenmiştir. Bu şartlar dahil edilme kriterlerinden biri olarak kabul edildi. Kayıt listesinde yer alan 526 katılımcıdan 130 yaşlı yetişkin rastgele seçilmiştir. 8 katılımcı uzuvların sakatlıklarını da içeren dışlama ölçütlerine göre bu çalışmadan çıkarılmıştır; yürüme anormallikleri; çalışmadan önceki 6 ayda ameliyat olmuş; nörolojik anormallik tanısı; şiddetli depresyon tanısı; körlük veya ciddi görme bozukluğu; ve kanser teşhisi. Topluluk egzersiz gruplarına katılan yaşlılar da çalışma dışı bırakıldı. En sonunda,Şekil 1 ).

      Şekil 1. Yaşlanan popülasyon için örnek seçim ve müdahale çalışması tasarım şeması (BR = Siyah pirinç tohumu ve kepek takviyesi müdahale grubu, EX = Egzersiz müdahale grubu, BR + EX = Takviye alımı ve egzersiz müdahale grubu ve CTRL = Kontrol kombinasyonu grubu).
      Başlangıçta, katılımcılar bir tarama yöntemi olarak hizmet veren ayrıntılı bir sağlık değerlendirmesi yaptılar. Tarama süreci, Chiang Mai Üniversitesi Tıp Fakültesi, Toplum Hekimliği Anabilim Dalı'nda iyi eğitimli araştırmacılar ve doktorlar tarafından denetlendi. Tarama yöntemi anketler, fiziksel ölçümler ve bölgede çalışan pratisyenler tarafından tutulan tıbbi kayıtların gözden geçirilmesinden oluşmaktaydı. Katılımcılara, bir doktora kendilerine şu koşullardan herhangi birine sahip olup olmadıklarını söyledikleri soruldu: miyokard enfarktüsü, diyabet veya yüksek kan şekeri, yüksek kan kolesterolü, osteoartrit veya osteoporoz.

      2.2. Müdahale Programları

      Katılımcılar, eşleşen bir çift tasarım kullanılarak dört gruba ayrıldı. Bu gruplar 3 müdahale grubu ve tek bir kontrol grubundan oluşmaktadır. Bu çalışma grubunun popülasyonunun genelleştirilmesi açısından örnek seçimi dikkatle yapılmıştır. Siyah pirinç tohumu ve kepek alım grubu (BR), siyah pirinç tohumu ve kepek anlık tozunu (Tay FDA onaylı ticari olarak satılan bir ürün) içmeye atandı. Kara pirinç tohumu ve kepek tozu takviyesinin besin değerleri Tablo 1'de verilmektedir . Dozaj, günde toplam 300 mg antosiyanin sağlayan günde 10 g siyah pirinç hazır tozundan oluşuyordu. Bunun immünomodülatör etkileri teşvik etmek için yeterli olduğu bulunmuştur [ 47]. Bu çalışmada günlük olarak deneklere verilen siyah pirinç hazır tozundaki toplam antosiyanin içeriği miktarı 32 mg / g siyah pirinç tozuna karşılık geldi ve bu miktarın bu çalışmanın sağlığını geliştirici amaçları için uygun bir doz olduğu kabul edildi. [ 40 , 42]. Katılımcılara siyah pirinç hazır tozu paketini 150 mL ile karıştırmaları söylendi. sıcak su ve kahvaltıdan sonra ve akşam yemeğinden sonra hazırlanan içeceği içmek. Denekler yemekten sonra içeceği tüketmeyi unutmuşlarsa, katılımcılar reçete edilen içeceği içtiklerini hatırlar hatırlamaz içebilirler. Katılımcıların bu çalışmaya uyumu, siyah pirinç tohumu ve kepek tozu sayımının kalıntı paketinin takibi ve boş paketin geri dönüşü ile ölçülmüştür. Kısaca, katılımcılardan son 2 hafta boyunca tüketilen siyah pirinç tohumu ve kepek tozunun boş paketlerini ve gelecek 2 hafta boyunca yeni siyah pirinç tozu paketini almaları istenmiştir.
      Tablo 1. Kara pirinç tohumu ve kepek takviyesinin besin değeri bilgileri ve biyoaktif bileşenleri.

      Egzersiz grubu (EX), daha önce tarif edildiği gibi yaşlı yetişkinler için bir egzersiz eğitim programından uyarlanan bir rejimi izledi [ 48]. Bu gruptaki denekler, 12 hafta boyunca haftada üç kez reçete edilen bir fizyoterapist gösterisini takiben belirli fiziksel aktiviteler yapmak üzere görevlendirildi. Tatbikat faaliyetleri, Pasang ve Khua Mung Bölgesi yerel Sağlığı Teşvik Eden Hastanelerde gerçekleştirildi. Egzersiz müdahalesi, 5 dakika boyunca bir ısınma periyodu, 40 dakika boyunca egzersiz eğitimi ve müteakip 5 dakika boyunca bir soğuma süresi içeren 3 seanstan oluşuyordu. Isınma seansında boyun, kollar, bilekler, sırt, sıkı, dizler gerilmiş ve daha sonra nefes egzersizleri yapılmıştır. Egzersiz eğitimi oturumu dokuz güçlendirme hareketi içeriyordu (Ayakta durma, Diz yükseltme ayakta, Sandalyeye oturmak, Lunges geri adım atma, Ayakta durma, Adım adım ayakta, Geri adım atma, Adım adım ayakta, ve 3 adım ayakta) ve sekiz denge egzersiz hareketi (Cehennemden ayağa ayakta, Yan bacak kaldırma, Topuk kaldırma, Buzağı ve ayak kaldırma, Tek bacak ayakta, Gözlerin kapalı olduğu çift bacak duruşu, Kararsız yüzeylerde çift bacak duruşu ve Çapraz ). Her hareket, her turda 2 dakikalık bir ara ile iki tur için on kez gerçekleştirildi. Yürüme ve ayakta durma dengesi egzersizi için, katılımcılara 20 basamakta yürümeleri ve ardından her turda 15 saniye beklemeleri verilmiştir. Soğuma oturumu için hareketler ısınma oturumlarına benzerdi. 12 hafta daha, egzersiz müdahalesi evde yapılan bir egzersiz rejimi olarak sürdürüldü. Katılımcılara kendi evlerinde benzer bir egzersiz programına devam etmeleri talimatı verildi. Tüm katılımcıların uygunluk ve isteklilik düzeyleri katılım kaydı ile ölçülmüş, bu, egzersiz programının yapıldığı yerde ve evde yapılan egzersiz döneminde evlerinde katılımcıların varlığı olarak ifade edilir. Katılım verileri, yerel sağlığı geliştiren hastane personeli tarafından kaydedildi ve katılım yüzdesi olarak hesaplandı. Müdahale sırasında katılımcılar, Toplum Hekimliği Departmanından doktorlar ve yerel sağlığı geliştiren hastanelerden gönüllü memurlar tarafından teşvik edilmiş ve takip edilmiştir.
      Birleşik siyah pirinç tohumu ve kepek alımı ve egzersiz müdahalesi (BR + EX) gruplarına katılanlar 24 hafta boyunca günde 10 g miktarında siyah pirinç hazır tozu içmeye atandılar ve yerel sağlıkta egzersiz müdahalesine katıldılar. 12 hafta boyunca hastaneyi teşvik etmek ve 12 hafta daha ev tabanlı egzersiz rejimi ile devam etmek. Kontrol grubuna, müdahale programı olmayan yaşlılar için beslenme ve genel fiziksel aktiviteler açısından sağlık eğitimi verilmiştir. 2.3. Sonuç Ölçümleri

      Tüm sonuç ölçümleri, her müdahale grubunun tüm katılımcıları için müdahale programının 12. (T1) ve 24. (T2) haftalarının sonunda başlangıçta (T0) gerçekleştirildi. Fiziksel Performans 6 metrelik bir seyirde yürüyüş hızı ile değerlendirildi. Katılımcılara normal hızlarında yürümeleri söylendi. Her katılımcının ayağı işaretli yolun sonunda zemine dokunduğunda zamanlama durduruldu [ 49 ]. Tutamak gücü, dijital el dinamometresi (TAKEI TKK5401 ® , Takei Scientific Instruments Co., Ltd, Tokyo, Japonya) kullanılarak üst vücut kas gücünün bir tahmini olarak ölçüldü . Kavrama kuvveti, kas kuvvetini ölçmek için geçerli ve güvenilir bir yöntem olarak kabul edilmektedir [ 50 , 51]. Her katılımcının baskın eli kavrama gücü açısından test edilmiştir. Katılımcılar omuzlarını hafifçe bükerek, 90 derecelik fleksiyonda dirsek ve bilekler nötr bir pozisyonda durdular. Katılımcılardan test sırasında bu pozisyonu muhafaza etmeleri ve dinamometreyi maksimum güçlerini 2-3 saniye kullanarak sıkmaları istenmiştir. Prosedür, her ölçüm arasında en az 15 saniyelik bir dinlenme süresi ile üç kez gerçekleştirildi. 3 çalışmanın ortalama değeri bildirilmiştir. Oturuşta Durma testi, alt ekstremite işlevinin bir ölçümü olarak kullanılan Beş Kez Oturup Durma testine (FTSS) dayanmaktadır [ 52]. Katılımcılardan 45 cm boyunda bir sandalyede FTSS'den kollar göğüs boyunca katlanmış olarak istendi. Test oturma pozisyonundan kalkmayı ve itmeden beş kez oturmayı içeriyordu. Zamanlayıcı, değerlendirici “git” kelimesini söylediğinde başladı ve katılımcının kalçaları beşinci standın ardından koltuğa ulaştığında durdu. Değerlendiriciler katılımcıların fiziksel yardım almadan olabildiğince beş kez ayakta durmalarını ve oturmalarını istediler. Fried'in beş fenotipik zayıflık ölçütü modeli (kilo kaybı, tükenme, düşük fiziksel aktivite, zayıflık ve yavaşlık) kullanılarak bu popülasyon için zayıflık ölçümü de iç kontrol amacıyla tanımlanmıştır [ 53]. Katılımcılar zayıf olmayan (fenotipik kriterlerin hiçbirini karşılamayanlar), ön zayıflık (fenotipik kriterlerden bir veya ikisini karşılayanlar) ve zayıf (fenotipik kriterlerin üç veya daha fazla veri noktasını karşılayanlar) olarak sınıflandırıldı. . Depresyon, depresyon şiddeti için 9 sorudan oluşan bir değerlendirme aracı (9Q) ile 0 ila 27 arasında değişen puanlarla değerlendirildi. 7 veya daha fazla puan, depresif belirtileri gösterdi. Bilişsel durum Mini-Mental Durum Muayene-Tayland versiyonu (MMSE-Tayland) ile skorları 0 ile 29 arasında değişmektedir [ 54 ]. İlköğretim alan yaşlı erişkinlerde 17 veya daha düşük bir puan, bilişsel bozulmayı gösterdi.
      Gece boyunca oruç tutulduktan sonra kan alma işlemi gerçekleştirildi; burada gece vakti 7: 00-09: 30 arasında antekubital venden 15 mL kan alındı. Kan örneklerinin mümkün olduğunca hızlı bir şekilde laboratuvara alınmasına büyük özen gösterilmiş ve kan toplama prosedüründen sonraki 3 saat içinde işleme tabi tutulmuş örnekler alınmıştır. EDTA plazma ve serum örnekleri alınmış ve tam kan sayımı (CBC), lipit profili (toplam kolesterol, trigliseritler, HDL-kolesterol ve LDL-kolesterol), karaciğer enzimleri (AST ve ALT), böbrek fonksiyon testleri (BUN, Kreatinin) için analiz edilmiştir. . Açlık kan şekeri açısından analiz edilen NaF tüpünde bulunan plazma. IL-6, CRP ve IGF-1 seviyeleri de dahil olmak üzere yaşlanan biyobelirteç ölçümlerinde kullanılmak üzere serum alikuotları dondurulmuş depolanmış kriyojenik tüplerde −80 ° C'de tutuldu. Bu biyobelirteçlerin serum seviyeleri ELISA kitleri (IL-6; Biolegend, ABD ve CRP & IGF-1; Abcam, İngiltere) ile ölçülmüştür. İmmünoenzans biyobelirteçleri için, CD4 floresan izotiyosiyanat (FITC) / CD8 phycoerythrin / PE8 / CD8 phycoerythrin (PE) başına üç renkli doğrudan immünofloresan (Tri-test) akış sitometrisi (Becton Dickinson FACScan Akış Sitometresi) ile analiz edildi protein (PerCP). Floresans etiketli bir antikor BD Biosciences'dan (Oxford, UK) elde edildi. CD4 floresan izotiyosiyanat (FITC) / CD8 phycoerythrin (PE) / CD3 peridinin klorofil protein PerCP (PerCP) için üç renkli doğrudan immünofloresan (Tri-test) akış-sitometrisi (Becton Dickinson FACScan Akış Sitometresi) ile lenfosit immünofenotipleme ve kan örnekleri analiz edildi . Floresans etiketli bir antikor BD Biosciences'dan (Oxford, UK) elde edildi. CD4 floresan izotiyosiyanat (FITC) / CD8 phycoerythrin (PE) / CD3 peridinin klorofil protein PerCP (PerCP) için üç renkli doğrudan immünofloresan (Tri-test) akış-sitometrisi (Becton Dickinson FACScan Akış Sitometresi) ile lenfosit immünofenotipleme ve kan örnekleri analiz edildi . Floresans etiketli bir antikor BD Biosciences'dan (Oxford, UK) elde edildi.

      2.4. Örnek Büyüklüğü Hesaplaması ve İstatistiksel Analiz

      Örneklem büyüklüğü,% 95 güven aralığı ile otur-kalk testi ve anlamlılık seviyesi 0.01 ve% 90 güç ile bilateral hipotez testi temel alınarak hesaplanmıştır. Her grup için toplam 26 denek gerekti. Müdahale grubu için% 20'lik bir uyumsuzluk oranı ve 120 katılımcının nihai örneklem büyüklüğü için% 20'lik bir okulu bırakma oranı dikkate alınmıştır (grup başına en az 30 kişi).
      Demografik ve genel sağlık verileri ile kırılganlık durumu, depresyon skoru ve bilişsel işlevler üzerine tanımlayıcı analiz yapıldı. Sürekli değişkenler için dağılımın normalliğini değerlendirmek için Kolmogorov-Smirnov testi kullanıldı ve veriler ortalamanın ortalama ± SD veya ± standart hatası (SE) olarak ifade edildi. Kategorik değişkenler için sayılar, yüzdeler ve medyan kullanıldı. Grup içi karşılaştırmalar (T0, T1 ve T2 haftaları arasında) sürekli veriler için tekrarlanan ölçülen ANOVA ve Bonferroni testleri ve kategorik veriler için Friedman testi kullanılarak yapılmıştır. Her parametre için, karşılaştırmadan önce, 4 farklı müdahale grubundan elde edilen temel verilerin (T0) ortalama değerleri, sürekli veri ve kategorik veriler için tek yönlü ANOVA ve Kruskal-Wallis H testi kullanılarak anlamlı olmayan bir fark olarak kabul edildi, sırasıyla. Anlamlı seviyep <0.05 veya <0.01. Tüm analizler SPSS 21.0 (IBM, New York, ABD) kullanılarak yapıldı. Eksik veriler değiştirilmedi.

      2.5. Etik değer

      Tüm denekler çalışmaya katılmadan önce dahil edilmek üzere bilgilendirilmiş olur verdiler. Çalışma Helsinki Bildirgesi'ne uygun olarak gerçekleştirildi ve protokol Chiang Mai Üniversitesi Tıp Fakültesi Etik Komitesi tarafından onaylandı (Etik numarası: COM-2561-05171: Onay tarihi; 22 Ağustos 2018). 3. Sonuçlar

      3.1. Yaşlanan Nüfusun Sosyodemografik Özelliklerinin ve Sağlık Profilinin Temel Tanımlayıcı Verileri

      122 katılımcının temel özellikleri Tablo 2'de gösterilmektedir . Müdahale grupları arasında, sosyodemografik veriler veya sağlık profilleri açısından taban çizgisi karakteristiklerinde anlamlı bir fark gözlenmemiştir ( p > 0.05). Başlangıçta, Fried'in modelini kullanarak kırılgan fenotiplerin taranması, müdahale grupları arasında hem ortalama kırılganlık skorunda hem de kırılgan deneklerin yüzdesinde anlamlı bir fark bulamadı ( p> 0.05). CBC, toplam kolesterol, karaciğer enzimleri (AST & ALT), böbrek fonksiyon testleri (BUN, Kreatinin), açlık kan şekeri ve yaşlanan biyobelirteçleri (IL-6, CRP, IGF-1) içeren kan bazlı sağlık profili ve immünosenans biyobelirteçleri de başlangıç ​​noktasındaki (T0) müdahale grupları arasında anlamlı bir fark bulamadılar (veriler Tablo 3 ve Tablo 4'teki 24 haftalık müdahalenin başlangıç ​​değeri veya T0 sütunu olarak gösterilmektedir , tüm p değerleri> 0.05).
      Tablo 2. Katılımcıların sosyodemografik özellikleri ve sağlık profillerinin başlangıç ​​(T0) tanımlayıcı verileri.

      Tablo 3. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubunun genel kan bazlı sağlık profili parametrelerindeki değişiklikler (böbrek fonksiyonu, karaciğer enzimleri ve açlık kan şekeri).

      Tablo 4. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubundaki genel kan bazlı sağlık profili parametrelerindeki (lipit profili, LDL: HDL- ve kolesterol: HDL oranı) değişiklikler.


      3.2. 24 Haftalık Müdahale Sürecinde Kan Bazlı Sağlık Profilindeki ve Yaşlanan Biyobelirteçlerdeki Değişiklikler

      3.2.1. Kan Tabanlı Sağlık Profilindeki Değişiklikler

      Müdahale programının başlangıcından itibaren 24 hafta boyunca toplam 120 denek (erkek, n = 45 .; kadın, n = 75) müdahale programını tamamlarken, 2 katılımcı müdahale öncesi çalışmadan çekilmiştir. kişisel sağlık nedenleri veya programa katılmaya devam etme isteğinin olmaması nedeniyle sona ermiştir.
      Yaşlanan biyobelirteçlerin ve immünosenesans biyobelirteçlerin gelişimini belirlemeden önce, ilk olarak tam kan sayımını, lipit profilini, ölçerek 4 farklı grubun katılımcılarının 24 haftalık müdahale programlarının genel kan sağlığı profilleri üzerindeki etkisini belirledik. Tablo 3 ve Tablo 4'te gösterildiği gibi açlık kan şekeri, karaciğer enzimi ve böbrek fonksiyon parametreleri . 24 haftalık süre boyunca, CTRL grubu dahil olmak üzere her müdahale grubu, CBC (RBC sayımı, hemoglobin, trombosit sayımı, WBC sayımı ve diferansiyel sayımı, veriler gösterilmemiştir), böbrek fonksiyonu açısından anlamlı bir etki bildirmemiştir. ve ilgili grupların her birindeki T0 değeri ile karşılaştırıldığında karaciğer enzim parametreleri (T1'e karşı T0 ve T2'ye karşı T0, hepsi p> 0.05). Bununla birlikte, 24. haftada sadece siyah pirinç (BR) grubundaki katılımcıların kan toplam kolesterol ve trigliseritlerinde anlamlı bir azalma gözlenmiştir (T2 ve T0, p <0.05). Ek olarak, 12 ve 24. haftalarda kombine müdahale (BR + EX) grubunun katılımcılarında, başlangıç ​​verilerine (T1'e karşı T0 ve T2'ye karşı T0, her ikisi de p <0.01). Genel olarak, müdahale programlarının hepsinin, 24 haftalık bir kurs süresi boyunca her gruptaki katılımcıların genel sağlık profili açısından olumsuz bir etkisi olmamıştır.

      3.2.2. Yaşlanan Biyobelirteçlerdeki Değişiklikler

      24 haftalık müdahale programlarının her gruptaki yaşlanan biyobelirteçlerdeki değişiklikler üzerindeki etkilerini belirlemek için, enflamatuar biyobelirteçlerin (IL-6 ve CRP), endokrin biyobelirteç (IGF-1) ve immünosenesans biyobelirteçlerin (CD4 + ) serum düzeylerini tespit ettik. / CD8 + T hücre oranı). Her grupta (BR, EX, BR + EX ve CTRL grubu) değiştirilen yaşlanma biyobelirteçleri, Şekil 2 ve Şekil 3'te gösterilmiş ve Tablo 5'te yeniden tablolaştırılmıştır . Temel verilerle (T0) karşılaştırıldığında, tek başına siyah pirinç takviyesi (BR) grubu 24. haftada serum CRP düzeylerinde anlamlı bir düşüş gösterdi (T2 ve T0, p<0.05) hem 12. hem de 24. haftalarda serum IGF-1 düzeylerinde anlamlı bir artışla birlikte (sırasıyla T1 ve T0 ve T2 ve T0, p <0.001 ile). Başka bir enflamatuar biyobelirteç olan serum IL-6 seviyelerinin, sadece BR grubunda müdahale süresi boyunca sınırda anlamlı bir şekilde azaldığı bulunmuştur ( p = 0.058). Sadece egzersiz müdahalesi (EX) grubu da BR grubuyla aynı önemli değişiklik eğilimini izledi, CRP seviyeleri bir düşüş gösterdi, IGF-1 seviyesi ise her bir parametrenin kendi taban çizgisine kıyasla arttı. Ancak, müdahale programının 24. haftasına kadar önemli farklılıklar gözlenmemiştir (T2 ve T0, her ikisi de p <0.001).

      Şekil 2. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubundaki yaşlanan biyobelirteçlerdeki değişiklikler: ( a ) İnterlökin-6 düzeyleri; ( b ) C-reaktif protein seviyeleri; ( c ) İnsülin benzeri büyüme faktörü-1 seviyeleri (veriler ortalama ± SE, BR = Siyah pirinç tohumu ve sadece kepek grubu olarak ifade edildi, EX = Yalnız egzersiz grubu, BR + EX = Birleşik grup ve CTRL = Kontrol grubu) * p <0.05, ** p <0.001 , tekrarlanan ölçüm ANOVA kullanılarak istatistiksel anlamlılığa sahip taban çizgisine karşı.

      Şekil 3. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubunun hepsinde immünosenesans biyobelirteçlerindeki değişiklikler: ( a )% CD4 + T hücreleri; ( b )% CD8 + T hücreleri; ( c ) CD4 + / CD8 + T hücre oranı. (veriler ortalama ± SE, BR = Siyah pirinç tohumu ve kepek grubu, EX = Tek başına egzersiz grubu, BR + EX = Birleşik grup ve CTRL = Kontrol grubu) olarak ifade edildi). * tekrarlanan ölçüm ANOVA kullanılarak istatistiksel anlamlılık ile taban çizgisine karşı p <0.05.
      Tablo 5. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubunun tümünde yaşlanma ve immünosenans biyobelirteçlerindeki değişiklikler. (T0 = taban çizgisi, T1 = 12 hafta, T2 = 24 hafta.).

      Beklendiği gibi, birleşik müdahale (BR + EX) grubu müdahale programının 24. haftasında dikkate değer değişiklikler göstermiştir. Temel verilerle karşılaştırıldığında, hem müdahale IGF-1 düzeylerinde hem de% 'nde önemli bir artış ile birlikte , her iki enflamatuar biyobelirteçlerin serum düzeylerinde önemli azalmalar gözlendi (IL-6 ve CRP, her ikisi p <0.05) CD4 T hücreleri ( sırasıyla p <0.001 ve p <0.05). Şaşırtıcı bir şekilde, tüm müdahale grupları (BR, EX ve BR + EX grupları) CD4: CD8 T hücre oranı biyobelirteçinde (tüm p> Taban çizgisine karşı 0.05). Ek olarak, 24 haftalık müdahale programı sırasında kontrol (CTRL) grubunun tüm parametreleri arasında anlamlı bir değişiklik gözlenmemiştir (tümü p> 0.05). Genel olarak, sadece BR ve EX grupları, müdahalenin T0 haftasına kıyasla 24. haftada CRP düzeylerindeki düşüşler ve IGF-1 düzeylerindeki artışlar açısından önemli etkiler göstermiştir. Birleşik BR + EX müdahalesinin, hem enflamatuar biyobelirteç düzeylerinde (IL-6 ve CRP) azalma ve müdahalenin 24. haftasında endokrin biyobelirteç düzeylerinde (IGF-1) artışlar açısından önemli etkileri vardır. Ayrıca, kombine BR + EX grubu ve tek başına BL grubu arasında yaşlanan biyobelirteçlerdeki değişiklikleri karşılaştırırken, kombine grup, BL grubundan (IL-6, CRP ve IGF-1) farklı olan BL grubundan (IL-6, CRP ve IGF-1) önemli etkiler ortaya koydu. T1-T0 ve T2-T0'ın ortalama farkları, hepsi p <0.05; veriler gösterilmemiştir).

      3.3. 24 Hafta Müdahale Sürecinde Fiziksel Performans ve Kas Gücü Değişimleri

      Her gruptaki (BR, EX, BR + EX ve kontrol grubu) fiziksel performans ve kas gücü değişiklikleri Şekil 4'te gösterilmiş ve veriler yeniden tablolaştırılmış ve Tablo 6'da sunulmuştur . Başlangıç ​​verileri (T0) ile karşılaştırıldığında, tek başına egzersiz (EX) grubu, müdahale döneminin hem 12. (T1) hem de 24. (T2) haftalarında oturma-bekleme süresinde önemli bir iyileşme gösterdi ( p <0.01), yanı sıra müdahale süresinin 12. haftasında yürüyüş hızı için ( p = 0.019). Ayrıca, kombine müdahale (BR + EX) grubu, müdahale programının 12. ve 24. haftalarında taban çizgisine (T1 vs.T0 ve T2 vs. T0, her ikisi de p<0.01). Tüm müdahale gruplarında kavrama gücünde önemli bir değişiklik gözlenmemiştir. Bununla birlikte, BR + EX grubundaki katılımcılar kavrama gücünde sınırda anlamlı bir iyileşme eğilimi göstermişlerdir ( p = 0.088). Ek müdahale grubu için, tek başına siyah pirinç (BR) grubu , daha önce açıklandığı gibi egzersiz grubu (BR + EX) ile birleştirilmiş olanlar hariç, fiziksel performans veya kas gücü parametreleri (tümü p > 0.05) üzerinde anlamlı bir etki bildirmemiştir. . 24 haftalık müdahale programı sırasında CTRL grubundaki tüm parametreler arasında anlamlı bir değişiklik gözlenmedi (tümü p> 0.05). Ayrıca, kombine BR + EX grubu ve sadece EX grubu arasındaki fiziksel performanslar ve kas gücü parametrelerindeki önemli değişiklikleri karşılaştırırken, kombine müdahale, sadece EX grubu ile karşılaştırıldığında STS zamanı ve yürüyüş hızı süresinde anlamlı bir ortalama fark gösterdi müdahale periyodunun 12. ve 24. haftaları ( sırasıyla T1-T0 ve T2-T0, p <0.01 ve p <0.001; veriler gösterilmemiştir). Genel olarak, sadece BR + EX ve EX grupları fiziksel performans ve düşük vücut kas gücü açısından önemli iyileşmeler göstermiştir (hem STS süresinin hem de yürüyüş hızı süresinin azalması ile kanıtlandığı gibi). Özellikle, kombine grup, sadece EX grubundan farklı fiziksel parametreler açısından anlamlı iyileşme etkileri göstermiştir.

      Şekil 4. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubunun hepsinde Oturmak (Üst), Yürüyüş Hızı (Orta) ve Kavrama Gücünde (alt) değişiklikler (BR = Siyah pirinç tohumu ve sadece kepek grubu, EX = Egzersiz) tek başına grup, BR + EX = Birleşik grup ve CTRL = Kontrol grubu) * p <0.05, ** p <0.001 ve Friedman testi kullanılarak istatistiksel anlamlılığa sahip taban çizgisi.
      Tablo 6. 24 haftalık müdahale süresi boyunca 4 farklı müdahale grubunun tümünde fiziksel performans ve kas gücü parametrelerindeki değişiklikler (T0 = başlangıç, T1 = 12 hafta, T2 = 24 hafta).


      4. Tartışma

      Olumsuz bir etkiye dönüşen yaşlanma süreci, kardiyovasküler hastalıklar, tip 2 diyabet, kanser ve nörodejeneratif durumlar gibi kronik hastalıklara yakalanma riski artacak yaşlanan bir birey olarak tanımlanmaktadır [ 55 , 56 ]. Sağlıksız yaşlanmaya yol açabilecek olası etiyolojik faktörlerden birinin, inflamasyon-yaşlanma olarak adlandırılan kronik inflamasyonu tetikleyen bir hasar birikiminin sonuçları ile ilişkili olduğuna inanılmaktadır [ 4 , 57]. İltihaplı yaşlanma belirleyicileri, IL-6 ve CRP gibi enflamatuar sitokin seviyelerinde bir artış içerir. Başka bir faktör, büyüme hormonu ve IGF-1 gibi somatotropik eksende yaşlanma sırasında endokrin sistemlerin bozulması için biyobelirteçlerden biri olarak kabul edilen hormonal seviyelerde bir dengesizliktir [ 58 , 59 ]. Tüm bu fenomenler fizyolojik değişiklikleri etkiler ve yaşlanan bireylerde kırılganlık belirtilerine katkıda bulunur [ 60 , 61 ].
      Kas-iskelet sistemi ve endokrin sistemleri, yaşlanma sürecinde fiziksel performans ve kas kuvvetindeki değişikliklerden sorumludur. Zayıflık ve yavaş motor performansı, sarkopeninin kardiyak özellikleri olarak kabul edilir, bu da kas kütlesi ve gücünde bir kaybı ifade eder [ 62 ]. Sarkopeninin patolojik etkileri α-motor nöronlar, tip I kas lifleri, kas atrofisi, kötü beslenme ve zayıflık sendromundaki değişiklikleri içermiştir [ 5 , 59 , 63 ]. Büyüme hormonu ve IGF-1, iskelet kası metabolik regülasyonu için gerekli olan hormonlardır. Daha düşük IGF-1 seviyeleri, daha yaşlı güçlerde CRP ve IL-6 seviyeleri de dahil olmak üzere düşük güç, hareket kabiliyeti ve inflamasyon belirteçlerinin artan seviyeleri ile ilişkilidir [19 , 64 ]. Toplumda yaşayan yaşlı yetişkinlerden oluşan bir kohortta düşük IGF-1 ve yüksek IL-6 düzeylerinin bir kombinasyonu, ilerleyen özürlülük ve ölüm için tek başına bu iki faktörden birinin etkisinden daha yüksek bir risk oluşturdu ve bu da ek bir etki olduğunu gösterdi [ 18 , 65 ]. Benzer şekilde, Roubenoff ve ark., Toplulukta yaşayan yaşlı yetişkinlerden oluşan bir kohortta, dört yıllık bir süre boyunca artan IL-6 hücresel üretiminin ve IGF-1'in hücresel üretiminin artmış ölüm oranlarıyla ilişkili olduğunu göstermiştir [ 66 ].
      Bu çalışma, hem egzersiz programını hem de iltihaplanan yaşlanma fenomenini hedefleyen ve yaşlanan popülasyondaki fiziksel sağlığı iyileştiren fitokimyasal destek müdahalelerinin etkilerini gösteren ilk rapordur. Sonuçlarımız, sadece 24 haftalık egzersiz programının (EX) müdahale programının, yaşlanan bireylerin serumunda artan IGF-1 seviyeleri üzerinde etkili olduğunu göstermiştir. Dahası, bu müdahalenin, genel fiziksel performansı ve düşük vücut kas gücünü yansıtabilen, oturma ve yürüme hız-zaman parametrelerini geliştirmesi üzerinde önemli bir etkisi olmuştur. Bununla birlikte, yürüyüş hızı süresinde iyileşmeler 24. haftanın sonuna kadar sürdürülemedi (Ö2). Egzersiz müdahalesi ile ilgili olarak, sonuçlarımız önceki bir çalışmanın sonuçlarıyla tutarlıdır,67 ]. Ek olarak, egzersiz, bir kasın gücü ve fonksiyonel hareketlilik üzerine bir egzersiz müdahalesinin olumlu etkilerini gösteren çok sayıda çalışma ile kanıtlandığı gibi, kas-iskelet sistemi, endokrin ve bağışıklık sistemleri üzerinde en tutarlı şekilde yararlı fizyolojik etkiler gösteren girişimsel bir yöntemdir [ 68 ] . Shahar ve ark., Sarkopenik yaşlılar için geliştirilen 12 haftalık bir egzersiz programı kullanarak kas gücü ve vücut kompozisyonunda belirgin bir artış olduğunu bildirmişlerdir [ 27 ]. Candow ve ark., 60-71 yaş arası sağlıklı yaşlı erkekler için 22 haftalık tüm vücut direnci egzersiz eğitim programının üst ve alt vücut gücünde yaşa bağlı eksikliklerin üstesinden gelmek için yeterli olduğunu bildirmişlerdir [ 69 ].
      Ek olarak, sadece siyah pirinç tohumu ve kepek takviyesi (BR) müdahalesi serumdaki CRP seviyelerini önemli ölçüde azaltabilirken, müdahalenin 24. haftasında bu grubun yaşlanan katılımcılarında serum IGF-1 seviyelerini tersine artırabilir. Şu anda, egzersize ek olarak, doğal ürünler artık bir dizi sağlık faydası sunan takviyeler olarak kullanılmaktadır. Bu yararlı etkiler, besinsel eksikliklerin, antienflamatuar ve antioksidan özelliklerin ve diğer potansiyel faydaların düzeltilmesini içermiştir. [ 33 , 68 , 70 , 71 , 72 ]. Pirinç yan ürünleri olan siyah pirinç tohumu ve kepeği, güçlü antioksidan ve antienflamatuar özelliklere sahip yüksek miktarda antosiyanin fitokimyasal içerir [41 , 42 ]. Ayrıca, daha önceki bir çalışmada, antosiyaninler içeren kızılcık suyu içeceğinin insan çalışmasında CRP düzeylerini düşürebileceği bulunmuştur [ 73 ]. Enflamatuar biyobelirteçlerin yanı sıra, sonuçlarımız BR takviyesinin tüketimi üzerine IGF-1 seviyelerinde önemli bir artış gösterdi. Bu sonuç, daha önce yayınlanmış bir raporun meyvelerin polifenol tüketiminden IGF-1 ekspresyonunda önemli bir artış gösteren bulgularla çakıştı ve bu da yaşlanan sıçan modelinde motor ve bilişsel performansların iyileşmesine neden olabilir [ 74]. Yaşlanan biyobelirteçlere ek olarak, tek başına BR takviyesi kandaki toplam kolesterol ve trigliserit seviyelerini önemli ölçüde azaltabilir. Sonuçlar, antosiyanin açısından zengin ürünlerin lipit düşürücü etkileri ile ilgili önceki çalışmaların sonuçlarıyla uyumludur [ 75 , 76]. Sadece BR müdahalesinden ne fiziksel performansın ne de kas gücü parametrelerinin anlamlı şekilde iyileşmediği şaşırtıcı değildir. Pigmentli pirinçte bulunan antosiyaninler genellikle endokrin modülasyonu ve antienflamasyon özellikleri açısından faydalı etkilerine odaklanır. Çalışmamızdaki siyah pirinç tohumu ve kepekinden farklı olarak, diğer çalışmalarda kullanılan makromoleküller, artmış kas proteini sentezinin bir göstergesi ve yaşlılarda kas kütlesi ve kas fonksiyonunu korumak için belirli takviye proteinlerine veya dallı zincirli amino asitlere odaklanmıştır [ 27 , 77 , 78 , 79]. Ayrıca, yaşlanan popülasyonlarda makromoleküllerin enflamatuar ve endokrin biyobelirteçler üzerindeki yararlı etkileri hakkında herhangi bir rapor bulunmamaktadır. Bu nedenlerden dolayı, siyah pirinç tohumu ve kepek takviyesi, iltihaplanma yaşlanmasına müdahale için potansiyel adaylar olarak listemize girdi.
      Son olarak, gerçekten, birleşik egzersiz programı ve siyah pirinç tohumu ve kepek takviyesi (BR + EX) müdahale programı, yaşlı yetişkinlerin düşük vücut kas gücünü ve fiziksel performans parametrelerini geliştirebilmiştir. Bu, stand-to-stand ve yürüyüş hızı performanslarındaki gelişmeler ölçülerek yapıldı. Ek olarak, bu birleşik müdahale aynı zamanda sadece EX müdahalesinden önemli ölçüde farklı olan olağanüstü etkiler de göstermiştir. Bu gelişme düzeyi deneyin sonuna kadar sürdürüldü (24. haftada). Elde ettiğimiz sonuç, egzersiz programı ve besin takviyesi kombinasyonundaki fiziksel performans ve kas gücünün, sadece egzersiz veya takviye ile karşılaştırıldığında daha yüksek etkinlik gösterdiği önceki çalışmalarla uyumluydu [ 80 ,81]. Ayrıca, yaşlanan biyobelirteçlerdeki değişikliklerle ilgili olarak, sonuçlarımız, kombine müdahalenin, IGF-1 biyobelirteçinin geliştirilmesi ve iltihaplı yaşlanan biyobelirteçlerin (hem CRP hem de IL- 6) 24 haftalık müdahale süresince. IL-6 enflamatuar sitokin seviyelerinin düşürülmesi ve fiziksel performanslar, düşük vücut kas gücü ve yaşlanan biyobelirteç modülasyonu açısından sürdürülebilir etkilerle birlikte, egzersiz programı ve siyah pirinç tohumu ve kepek takviyesi üzerinde sinerjik etkiler olduğunu varsayıyoruz. . Daha önce, siyah pirincin belirgin anti-inflamasyon özellikleri hakkında birçok çalışma bildirilmiştir. Siyah pirinç ekstraktının immünokompetan hücrelerden sitokin üretimini inhibe edebildiği bulunmuştur [82 ], ayrıca, Limtrakul ve ark., Siyah pirinçten elde edilen antosiyanin bakımından zengin fraksiyonun, IL-6 ve TNF-a salgılarının inhibisyonu yoluyla makrofaj hücrelerindeki enflamatuar yanıtı önemli ölçüde baskılayabildiğini bildirmişlerdir [ 42 ]. Ek olarak, egzersiz ve diyet yaşam tarzı ile ilgili olarak, 15 haftalık bir günlük egzersiz ve kalori kontrollü diyet, inflamatuar biyobelirteç, CRP ve IL-6 seviyelerini önemli ölçüde düşürebilir ve insülin duyarlılığını artırabilir [ 83]. Bu yararlı etkiler, kombine müdahale grubumuzda açlık kan şekerinde önemli bir azalma ile birlikte inflamatuar biyobelirteçlerde de önemli düşüşler bildirildiğinden, çalışmamızın bulguları ile de uyumludur. Ne yazık ki, tüm müdahale gruplarının 24 haftalık periyodu boyunca, CD4: CD8 oranı ile ölçüldüğü üzere immünosenesans biyobelirteçinde anlamlı bir gelişme bulamadık. Ancak, bu çalışma 65-74 yaşları arasındaki erken yaşlanan popülasyona odaklandığından ve başlangıçtaki (T0) CD4: CD8 oranı normal referans değerindedir [ 84 , 85 ]. Bu nedenle, bu parametre bu yaş aralığındaki insanlar için bir risk faktörü olarak kabul edilmeyebilir.
      Bu çalışma, siyah pirinç tohumu ve kepek takviyesini ve 12 haftalık egzersiz programını, fiziksel performansları, kas gücünü ve yaşlanan biyobelirteçleri iyileştirmek için müdahale için ideal bir seçim olarak kullandı. Bu çalışmada araştırmacıların amacı, enflamatuar veya endokrinle ilişkili sistemik biyolojik değişikliklerin bir sonucu olarak önemli fiziksel gelişmeleri belirlemeye odaklanmıştır. Bu değişiklikler, düzensiz besin algılaması (somatotropik IGF-1 eksenindeki değişiklikler) ve hücre içi iletişimi (proinflamatuar sitokinlerin artan eşiğinden düşük dereceli kronik inflamasyon) açısından yaşlanmanın ayırt edici özellikleri olarak kabul edilmiştir [ 10]. Yukarıdaki işaretler, aşırı derecede ROS üretimine ve yaşlanan hücrelerin birikmesine yol açan NF-kB sinyal yolunun düzensizliği yoluyla mekanik olarak “iltihaplanma yaşlanması sürücüsü” perspektifinden birbirine bağlı bir yolu paylaşmaktadır [ 33 , 56 , 60 ] . Ek olarak, yaşlanma ile önemli ölçüde azalan IGF-1 gibi anabolik hormon seviyelerinin, artmış enflamatuar biyobelirteçlerle ters ilişkili olduğu bulunmuştur. Bu sonuç yaşlanan bireylerde kronik hastalıklara duyarlılığın artmasına neden olabilir [ 18 , 19 , 65]. Bununla birlikte, iltihaplanma ve somatotropik eksen yollarının potansiyel karışma mekanizmasının daha fazla araştırılması gerekmektedir.

      5. Sonuçlar

      Genel olarak, verilerimiz, siyah pirinç tohumu ve kepek takviyesinin, enflamatuar ve endokrin biyobelirteç modülasyonu yoluyla egzersiz programı ile birleştirildiğinde fiziksel performans ve düşük vücut kas gücünde iyileşmelerle sinerjik etkilerini ortaya koydu. Bu, fiziksel aktivite ve diyetle ilgili davranışlar açısından sağlıkla ilgili yaşam tarzlarını iyileştirmek isteyen yaşlanan bireyleri teşvik edebilir. Sonuç olarak, yaşam tarzında yapılan bu değişiklikler, yaşlı yetişkinlerde sağlıklı yaşlanmaya ve uzun ömürlülüğe yol açabilir. Ne yazık ki, 24 haftalık bir müdahale programı boyunca, üst vücut kas gücünün temsilcisi olarak kabul edilen kavrama gücünde önemli bir gelişme olmamıştır. Bu çalışmada, kavrama gücünün iyileştirilmediği belirtilmelidir. Bu, adaptasyon üretmek için egzersiz eğitimi programının yetersiz yoğunluğundan kaynaklanabilir. Belki de, daha yoğun bir eğitim programı ile muhtemelen kavrama gücünü ve bazı sonuçların değişimini artırabilir. Ayrıca, yaşlanan nüfusun örnek büyüklüğünün veya egzersiz programındaki bir uzantının ve / veya siyah pirinç takviyesi süresinin uzatılması, gelecekteki bir çalışma için daha doğru ve anlamlı bir sonuç sağlayabilir.

      Yazar Katkıları

      Kavramsallaştırma, PL ve PS; metodoloji, MS ve WS; yazılım, MS, WS ve RS; validasyon, SY ve KO; biçimsel analiz, MS, WS ve SY; araştırma, MS, WS, PA, RM ve JC; veri iyileştirme, SY ve RS; yazma — orijinal taslak hazırlama, MS ve WS; yazma - inceleme ve düzenleme, PL; görüntüleme, MS ve WS; denetim, PL ve PS; proje yönetimi, PL ve PS; fon edinimi, PL, SY ve PS Tüm yazarlar makalenin yayınlanmış versiyonunu okudular ve kabul ettiler.

      Finansman

      Bu araştırma, Tarımsal Araştırma Geliştirme Ajansı (Kamu Örgütü) (ARDA) (Hibe No. PRP6005021700) tarafından finanse edildi.

      Teşekkür

      Bu araştırma, Tayland Chiang Mai Üniversitesi, Chiang Mai Üniversitesi ve Sağlık için Doğal Ürünler Araştırma ve Geliştirme Merkezi tarafından desteklenmiştir. Bu araştırma Tayland Chiang Mai Üniversitesi Tıp Fakültesi Toplum Hekimliği Bölümü ve Kraliyet Altın Jübile Bursu Doktora tarafından da desteklenmiştir. Program (RGJ) (Hibe No. PHD / 0126/2559). Tüm katılımcılara bu çalışmaya uyumları ve katkılarından dolayı teşekkür ederiz.

      Çıkar çatışmaları

      Yazarlar çıkar çatışması bildirmemişlerdir. Referanslar
      1. Birleşmiş Milletler Ekonomik ve Sosyal İşler Dairesi Başkanlığı. Dünya Nüfus Beklentileri 2019: Önemli Noktalar ; Birleşmiş Milletler Ekonomik ve Sosyal İşler Departmanı: New York, NY, ABD, 2019. [ Google Akademik ]
      2. Nüfus ve Sosyal Araştırmalar Enstitüsü MU. Tayland Yaşlılarının Durumu 2015 ; Tayland Gerontoloji Araştırma ve Geliştirme Enstitüsü Vakfı: Bangkok, Tayland, 2015; s. 132. [ Google Akademik ]
      3. Fulop, T .; Larbi, A .; Dupuis, G .; Le Page, A .; Frost, EH; Cohen, AA; Witkowski, JM; Franceschi, C. Aynı madalyonun iki yüzü olarak immünosenesans ve iltihaplanma: Arkadaşlar mı yoksa düşmanlar mı? Ön. Immunol. 2018 , 8 , 1960. [ Google Akademik ] [ CrossRef ]
      4. Franceschi, C .; Campisi, J. Kronik inflamasyon (enflamasyon) ve yaşa bağlı hastalıklara potansiyel katkısı. J. Gerontol. Ser. Bir Biyomed. Sci. Med. Sci. 2014 , 69 (Ek 1), S4 – S9. [ Google Akademik ] [ CrossRef ]
      5. Janssen, I .; Heymsfield, SB; Wang, Z .; Ross, R. İskelet kası kütlesi ve 18-88 yaş arası 468 erkek ve kadında dağılım. J. Appl. Physiol. 2000 , 89 , 81-88. [ Google Akademik ] [ CrossRef ]
      6. Janssen, I .; Heymsfield, SB; Ross, R. Yaşlı kişilerde düşük göreceli iskelet kası kütlesi (sarkopeni) fonksiyonel bozukluk ve fiziksel sakatlık ile ilişkilidir. J. Am. Geriatr. Soc. 2002 , 50 , 889-896'da açıklanmaktadır. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      7. Szulc, P .; Beck, TJ; Marchand, F .; Delmas, PD Düşük iskelet kası kütlesi yaşlı erkeklerde kemik ve yapısal dengesinin zayıf olması ile ilişkilidir - MINOS çalışması. J. Bone Miner. Res. 2005 , 20 , 721-729'da açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      8. Baumann, CW; Kwak, D .; Liu, HM; Thompson, LV Yaşa bağlı oksidatif stres: İskelet kası miktarını ve kalitesini nasıl etkiler? J. Appl. Physiol. 2016 , 121 , 1047-1052. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      9. Newman, AB; Kupelian, V .; Visser, M .; Simonsick, EM; Goodpaster, BH; Kritchevsky, SB; Tylavsky, FA; Rubin, SM; Harris, TB Gücü, ancak kas kütlesi değil, sağlık, yaşlanma ve vücut kompozisyonu çalışma kohortundaki mortalite ile ilişkilidir. J. Gerontol. Ser. Bir Biol. Sci. Med. Sci. 2006 , 61 , 72-77. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      10. López-Otín, C .; Blasco, MA; Keklik, L .; Serrano, M .; Kroemer, G. Yaşlanmanın ayırt edici özellikleri. Celi 2013 , 153 , 1194-1217. [ Google Akademik ] [ CrossRef ]
      11. Linton, P .; Thoman, ML T hücre yaşlanması. Ön. Biosci. J. Virtual Libr. 2001 , 6 , D248-D261. [ Google Akademik ] [ CrossRef ]
      12. Kirkwood, T. Yaşlanmayı evrimsel bir perspektiften anlamak. J. Intern. Med. 2008 , 263 , 117-127. [ Google Akademik ] [ CrossRef ]
      13. Spadaro, O .; Goldberg, EL; Camell, CD; Youm, Y.-H .; Kopchick, JJ; Nguyen, KY; Bartke, A .; Güneş, LY; Dixit, VD Büyüme hormonu reseptör eksikliği yaşa bağlı NLRP3 inflamatom aktivasyonuna ve bağışıklık yaşlanmasına karşı korur. Celi Rep. 2016 , 14 , 1571–1580. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      14. Santy-Tomlinson, J .; Speerin, R .; Hertz, K .; Tochon-Laruaz, AC; van Oostwaard, M. Frailty, Sarcopenia ve Falls. In Kırılganlık Kırılma Hemşirelik ; Hertz, K., Santy-Tomlinson, J., Eds .; Springer: Cham, İsviçre, 2018; s. 15-26. [ Google Akademik ]
      15. Fulle, S .; Protasi, F .; Di Tano, G .; Pietrangelo, T .; Beltramin, A .; Boncompagni, S .; Vecchiet, L .; Fanò, G. Reaktif oksijen türlerinin sarkopeni ve kas yaşlanmasına katkısı. Tecrübe. Gerontol. 2004 , 39 , 17-24'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      16. Semba, RD; Ferrucci, L .; Güneş, K .; Walston, J .; Varadhan, R .; Guralnik, JM; Kızarmış, LP Oksidatif stres ve yaşlı kadınlar arasında ciddi yürüme özürü. Am. J. Med. 2007 , 120 , 1084-1089. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      17. Semmarath, W .; Seesen, M .; Yodkeeree, S .; Sapbamrer, R .; Ayood, P .; Malasao, R .; Siviroj, P .; Limtrakul (Dejkriengkraikul), P. Tayland'ın Eski Toplum Topluluklarında Kırılganlık Göstergeleri ile Kan Bazlı Biyobelirteçler Arasındaki İlişki. Int. J. Environ. Res. Halk Sağlığı 2019 , 16 , 3457. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      18. Fabbri, E .; Hiç.; Zoli, M .; Simonsick, EM; Guralnik, JM; Bandinelli, S .; Boyd, CM; Ferrucci, L. Yaşlanma ve multimorbiditenin yükü: Enflamatuar ve anabolik hormonal biyobelirteçlerle ilişkiler. J. Gerontol. Ser. Bir Biyomed. Sci. Med. Sci. 2014 , 70 , 63-70. [ Google Akademik ] [ CrossRef ]
      19. Rajpathak, SN; McGinn, AP; Strickler, HD; Rohan, TE; Pollak, M .; Cappola, AR; Kuller, L .; Xue, X .; Newman, AB; Strotmeyer, ES Yaşlı yetişkinler arasında insülin benzeri büyüme faktörü- (IGF) -aksisi, inflamasyonu ve glikoz intoleransı. Büyüme Hormonu. IGF Arş. 2008 , 18 , 166-173. [ Google Akademik ] [ CrossRef ]
      20. Maggio, M .; Cattabiani, C .; Lauretani, F .; Bandinelli, S .; De Vita, F .; Dall'Aglio, E .; Corsonello, A .; Lattanzio, F .; Paolisso, G .; Ferrucci, L. İnsülin benzeri büyüme faktörü-1 biyoaktivitesi yaşlı katılımcılarda prosurvival bir rol oynamaktadır. J. Gerontol. Ser. Bir Biyomed. Sci. Med. Sci. 2013 , 68 , 1342–1350. [ Google Akademik ] [ CrossRef ]
      21. Garatachea, N .; Pareja-Galeano, H .; Sanchis-Gomar, F .; Santos-Lozano, A .; Fiuza-Luces, C .; Morán, M .; Emanuele, E .; Joyner, MJ; Lucia, A. Egzersiz yaşlanmanın en önemli özelliklerini zayıflatır. Gençleştirme Arş. 2015 , 18 , 57-89. [ Google Akademik ] [ CrossRef ]
      22. Nicklas, BJ; Brinkley, TE Yaşlılarda kronik inflamasyon tedavisi için egzersiz eğitimi. Exerc. Sport Sci. Rev. 2009 , 37 , 165-170. [ Google Akademik ] [ CrossRef ]
      23. Giné-Garriga, M .; Guerra, M .; Pagès, E .; Manini, TM; Jiménez, R .; Unnithan, VB Zayıf yaşlı erişkinlerde fonksiyonel devre eğitiminin fiziksel zayıflığa etkisi: Randomize kontrollü bir çalışma. J. Aging Phys. Davranmak. 2010 , 18 , 401–424'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      24. Kidd, T .; Kalıp, F .; Jones, C .; Ream, E .; Grosvenor, W .; Sund-Levander, M .; Tingström, P .; Carey, N. Kırılganlık öncesi ve kırılgan yetişkinlerde fiziksel performansı artırmak için en etkili müdahaleler nelerdir? Randomize kontrol çalışmalarının sistematik olarak gözden geçirilmesi. BMC Geriatr. 2019 , 19 , 184. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      25. Cao, Z.-B .; Maeda, A .; Shima, N .; Kurata, H .; Nishizono, H. 12 haftalık kombine egzersiz müdahale programının toplumda yaşayan yaşlı kadınlarda fiziksel performans ve yürüyüş kinematiğine etkisi. J. Physiol. Anthropol. 2007 , 26 , 325-332. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      26. Luo, D .; Lin, Z .; Li, S .; Liu, S.-J. Egzersiz müdahalesiyle birlikte besin takviyesinin yaşlılarda sarkopeni üzerine etkisi: Bir meta-analiz. Int. J. Nurs. Sci. 2017 , 4 , 389-401'de açıklanmaktadır. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      27. Shahar, S .; Kamaruddin, NS; Badrasawi, M .; Sakian, NIM; Manaf, ZA; Yassin, Z .; Joseph, L. Sarkopenili yaşlı Malaylar arasında egzersiz ve protein takviyesi müdahalesinin vücut kompozisyonu, fonksiyonel uygunluk ve oksidatif stres üzerindeki etkinliği. Clin. Interv. Yaşlanma 2013 , 8 , 1365–1375. [ Google Akademik ] [ CrossRef ]
      28. Mocchegiani, E .; Costarelli, L .; Giacconi, R .; Cipriano, C .; Muti, E .; Tesei, S .; Malavolta, M. Yaşlanmada başarılı gen etkileşimi ve başarılı yaşlanma: Tek bir besin (Çinko) ve enflamatuar / bağışıklık tepkisine bağlı bazı hedef genler. Mech. Yaşlanma Dev. 2006 , 127 , 517-525. [ Google Akademik ] [ CrossRef ]
      29. Alarcon De La Lastra, C .; Villegas, I. Antienflamatuar ve yaşlanma karşıtı bir ajan olarak Resveratrol: Mekanizmalar ve klinik çıkarımlar. Mol. Nutr. Gıda Arş. 2005 , 49 , 405-430'da açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      30. Olesen, J .; Ringholm, S .; Nielsen, MM; Brandt, CT; Pedersen, JT; Halling, JF; Goodyear, LJ; Pilegaard, H. PGC-1α'nın egzersiz eğitiminde rolü ve yaşa bağlı inflamasyonun resveratrol kaynaklı önlenmesi. Tecrübe. Gerontol. 2013 , 48 , 1274-1284'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      31. Wahab, A .; Gao, K .; Jia, C .; Zhang, F .; Tian, ​​G .; Murtaza, G .; Chen, J. Kronik hastalıkların klinik yönetiminde resveratrolün önemi. Molecules 2017 , 22 , 1329. [ Google Akademik ] [ CrossRef ]
      32. Bakhtiari, M .; Panahi, Y .; Ameli, J .; Darvishi, B. Flavonoidlerin Alzheimer hastalığına bağlı nöral disfonksiyonlara karşı koruyucu etkileri. Biomed. Pharmacother. 2017 , 93 , 218-229. [ Google Akademik ] [ CrossRef ]
      33. Xia, S .; Zhang, X .; Zheng, S .; Khanabdali, R .; Kalionis, B .; Wu, J .; Wan, W .; Tai, X. İltihaplanma ile ilgili bir güncelleme: Mekanizmalar, korunma ve tedavi. J. Immunol. Res. 2016 , 2016 , 8426874. [ Google Akademik ] [ CrossRef ]
      34. Samyor, D .; Das, AB; Deka, SC Pigmentli pirinç potansiyel bir biyoaktif bileşik kaynağı: Bir gözden geçirme. Int. J. Food Sci. Technol. 2017 , 52 , 1073-1081. [ Google Akademik ] [ CrossRef ]
      35. Sohail, M .; Rakha, A .; Butt, MS; Iqbal, MJ; Rashid, S. Rice bran nutraceutics: Kapsamlı bir derleme. Crit. Rev. Food Sci. Nutr. 2017 , 57 , 3771–3780. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      36. Shao, Y .; Hu, Z .; Yu, Y .; Mou, R .; Zhu, Z .; Beta, T. Fenolik asitler, antosiyaninler, proantosiyanidinler, antioksidan aktivite, mineraller ve pigmentsiz, kırmızı ve siyah pirinçte korelasyonları. Food Chem. 2018 , 239 , 733-741. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      37. Limtrakul, P .; Semmarath, W .; Doğal Pigmentli Pirinçte Mapoung, S. Antosiyaninler ve Proantosiyanidinler ve Biyoaktiviteleri. Gelen İnsan Sağlığı Fitokimyasallar ; IntechOpen: Londra, İngiltere, 2019; s. 1-25. [ Google Akademik ]
      38. Moongngarm, A .; Daomukda, N .; Khumpika, S. Pirinç kepeği, pirinç kepeği tabakası ve pirinç tohumu kimyasal bileşimleri, fitokimyasallar ve antioksidan kapasitesi. Apcbee Prosedürü 2012 , 2 , 73-79. [ Google Akademik ] [ CrossRef ]
      39. Zhang, MW; Zhang, RF; Zhang, FX; Liu, RH Piyasada bulunan farklı çeşitlerde siyah pirinç kepeği fenolik profilleri ve antioksidan aktivitesi. J. Agric. Food Chem. 2010 , 58 , 7580-7587. [ Google Akademik ] [ CrossRef ]
      40. Pojer, E .; Mattivi, F .; Johnson, D .; Stockley, CS İnsan sağlığını geliştirmek için antosiyanin tüketimi davası: Bir gözden geçirme. Compr. Rev. Food Sci. Yiyecek Saf. 2013 , 12 , 483-508. [ Google Akademik ] [ CrossRef ]
      41. Dias, ALdS; Pachikian, B .; Larondelle, Y .; Quetin-Leclercq, J. Siyah pirincin biyoaktivitelerinde son gelişmeler. Curr. Opin. Clin. Nutr. Metab. Bakım 2017 , 20 , 470-476. [ Google Akademik ] [ CrossRef ]
      42. Limtrakul, P .; Yodkeeree, S .; Pitchakarn, P .; Punfa, W. RAF 264.7 makrofaj hücrelerinde NF-kB ve AP-1 sinyal yollarının aşağı regülasyonu yoluyla siyah pirinç özütü ile enflamatuar yanıtların bastırılması. Asya Pac. J. Cancer Önceki. 2015 , 16 , 4277-4283'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      43. Ichikawa, H .; Ichiyanagi, T .; Xu, B .; Yoshii, Y .; Nakajima, M .; Konishi, T. Mor siyah pirinçten antosiyanin özütünün antioksidan aktivitesi. J. Med. Gıda 2001 , 4 , 211-218. [ Google Akademik ] [ CrossRef ]
      44. Bhawamai, S .; Lin, S.-H .; Hou, Y.-Y .; Chen, Y.-H. Termal pişirme, fenolik bileşiklerin profilini değiştirir, ancak siyah pirincin anti-enflamatuar aktivitelerini zayıflatmaz. Gıda Nutr. Res. 2016 , 60 , 32941. [ Google Akademik ] [ CrossRef ]
      45. Hiemori, M .; Koh, E .; Mitchell, AE Siyah pirinçte ( Oryza sativa L. japonica var. SBR) antosiyaninler üzerinde pişirmenin etkisi . J. Agric. Food Chem. 2009 , 57 , 1908-1914. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      46. Ulusal İstatistik Ofisi. Tayland'daki Yaşlıların 2017 Araştırması Raporu ; İstatistiksel Tahmin Bölümü, Ulusal İstatistik Ofisi: Bangkok, Tayland, 2018; s. 266.
      47. Karlsen, A .; Retterstøl, L .; Laake, P .; Paur, I .; Kjølsrud-Bøhn, S .; Sandvik, L .; Blomhoff, R.Antosiyaninler, monositlerde nükleer faktör-B aktivasyonunu inhibe eder ve sağlıklı yetişkinlerde pro-enflamatuar aracıların plazma konsantrasyonlarını azaltır. J. Nutr. 2007 , 137 , 1951–1954. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      48. Paw, MJCA; Çin.; van Uffelen, JG; Riphagen, I .; van Mechelen, W. Zayıf yaşlı insanlarda fiziksel egzersiz eğitiminin fonksiyonel etkileri. Sports Med. 2008 , 38 , 781–793. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      49. Kim, H.-J .; Park, I .; Joo Lee, H .; Lee, O. Yaşlı yürüme hızlarında yürüyüş hızının ve genel sağlık, fiziksel fonksiyon ve kronik hastalıklara karşı uzaklığı ile yürüyüş hızının güvenilirliği ve geçerliliği. J. Exerc. Nutr. Biochem. 2016 , 20 , 46-50. [ Google Akademik ] [ CrossRef ]
      50. Desrosiers, J .; Bravo, G .; Hebert, R .; Dutil, E. Yaşlı erkek ve kadınların kavrama gücü için normatif veriler. Am. J. Occup. Ther. 1995 , 49 , 637-644'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      51. Fox, B .; Henwood, T .; Schaap, L .; Bruyère, O .; Reginster, J.-Y .; Beaudart, C .; Buckinx, F .; Roberts, H .; Cooper, C .; Cherubini, A. 65 yaş üstü erişkinlerde sarkopeni ile kavrama gücünü ve uygun kesme değerlerini ölçmek için standartlaştırılmış bir protokole bağlılık: Sistematik bir inceleme protokolü. JBI Veritabanı Sistemi Rev. Uygulama. Temsilcisi 2015 , 13 , 50-59. [ Google Akademik ] [ CrossRef ]
      52. Whitney, SL; Wrisley, DM; Marchetti, GF; Gee, MA; Redfern, MS; Furman, JM Denge bozukluğu olan kişilerde otur-kalk performansının klinik ölçümü: Beş-Zaman-Otur-Dur Testi için verilerin geçerliliği. Phys. Ther. 2005 , 85 , 1034-1045. [ Google Akademik ] [ CrossRef ]
      53. Kızarmış, LP; Tangen, CM; Walston, J .; Newman, AB; Hirsch, C .; Gottdiener, J .; Seeman, T .; Tracy, R .; Kop, WJ; Burke, G. Yaşlı yetişkinlerde zayıflık: Bir fenotip için kanıt. J. Gerontol. Ser. Bir Biol. Sci. Med. Sci. 2001 , 56 , M146-M157. [ Google Akademik ] [ CrossRef ]
      54. Silpakit, O .; Silpakit, C .; Pukdeenaul, P. Bilişsel bozukluk tarama araçlarının karşılaştırmalı bir çalışması: CDT, IQCODE VS MMSE. Siriraj Med. J. 2007 , 59 , 361-363'te açıklanmaktadır. [ Google Akademik ]
      55. Tracy, R. Enflamasyon, kardiyovasküler hastalık ve kronik yaşlanma hastalıkları. Int. J. Obes. 2003 , 27 , S29 – S34. [ Google Akademik ] [ CrossRef ]
      56. Bektaş, A .; Schurman, SH; Sen, R .; Ferrucci, L. Yaşlanma, iltihaplanma ve çevre. Tecrübe. Gerontol. 2018 , 105 , 10-18. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      57. Freund, A .; Orjalo, AV; Desprez, P.-Y .; Campisi, J. Hücresel yaşlanma sırasında enflamatuar ağlar: Nedenleri ve sonuçları. Trendler Mol. Med. 2010 , 16 , 238-246. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      58. Chung, HY; Cesari, M .; Anton, S .; Marzetti, E .; Giovannini, S .; Seo, AY; Carter, C .; Yu, BP; Leeuwenburgh, C. Moleküler inflamasyon: Yaşlanma ve yaşa bağlı hastalıkların temelleri. Yaşlanma Arş. Rev. 2009 , 8 , 18-30. [ Google Akademik ] [ CrossRef ]
      59. Elis, S .; Wu, Y .; Courtland, HW; Güneş, H .; Rosen, CJ; Adamo, ML; Yakar, S. Artmış serum IGF-1 seviyeleri kas-iskelet sistemini korur, ancak doku igf1 gen ekspresyonundan bağımsız olarak yükseltilmiş oksidatif stres belirteçleri ve artan mortalite ile ilişkilidir. Yaşlanan Hücre 2011 , 10 , 547-550. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      60. Franceschi, C .; Bonafè, M .; Valensin, S .; Olivieri, F .; De Luca, M .; Ottaviani, E .; De Benedictis, G. Inflamm-aging: İmmünosenesans üzerine evrimsel bir bakış. Ann. NY Acad. Sci. 2000 , 908 , 244-254. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      61. Espinoza, S .; Walston, JD Yaşlılarda JD Zayıflığı: İçgörüler ve müdahaleler. Clevel. Clin. J. Med. 2005 , 72 , 1105–1112'de açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      62. Roubenoff, R. Sarcopenia: Yaşlılarda kırılganlığın başlıca değiştirilebilir bir nedeni. J. Nutr. Sağlık Yaşlanma 2000 , 4 , 140-142. [ Google Akademik ]
      63. Giovannini, S .; Marzetti, E .; Borst, SE; Leeuwenburgh, C. GH / IGF-1 ekseninin modülasyonu: Yaşlı erişkinlerde sarkopeniye karşı koymak için potansiyel stratejiler. Mech. Yaşlanma Dev. 2008 , 129 , 593-601. [ Google Akademik ] [ CrossRef ]
      64. Taekema, DG; Ling, CH; Blauw, GJ; Meskers, CG; Westendorp, RG; De Craen, AJ; Maier, AB Dolaşımdaki IGF1 seviyeleri, orta yaşlı ve en yaşlı kadınlarda kas gücü ile ilişkilidir. Avro. Endocrinol. 2011 , 164 , 189-196. [ Google Akademik ] [ CrossRef ]
      65. Leng, SX; Cappola, AR; Andersen, RE; Blackman, MR; Koenig, K .; Blair, M .; Walston, JD Serum insülin benzeri büyüme faktörü-I (IGF-I) ve dehidroepiandrosteron sülfat (DHEA-S) seviyeleri ve kırılganlığın geriatrik sendromunda serum interlökin-6 ile ilişkileri. Yaşlanma Kliniği. Tecrübe. Res. 2004 , 16 , 153-157'de tarif edilmektedir. [ Google Akademik ] [ CrossRef ]
      66. Roubenoff, R .; Parise, H .; Payette, HA; Abad, LW; D'Agostino, R .; Jacques, PF; Wilson, PW; Dinarello, CA; Harris, TB Sitokinler, insülin benzeri büyüme faktörü 1, sarkopeni ve toplumda yaşayan çok yaşlı erkek ve kadınlarda mortalite: Framingham Kalp Çalışması. Am. J. Med. 2003 , 115 , 429-435'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      67. Theou, O .; Stathokostas, L .; Roland, KP; Jakobi, JM; Patterson, C .; Vandervoort, AA; Jones, GR Kırılganlığın yönetimi için egzersiz müdahalelerinin etkinliği: Sistematik bir gözden geçirme. J. Aging Res. 2011 , 2011 , 569194. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      68. Forbes, SC; Küçük, JP; Candow, DG Yaşlanan kas sağlığını iyileştirmek için egzersiz ve beslenme müdahaleleri. Endokrin 2012 , 42 , 29-38. [ Google Akademik ] [ CrossRef ]
      69. Candow, DG; Chilibeck, PD; Abeysekara, S .; Zello, GA Kısa süreli ağır direnç antrenmanı, sağlıklı yaşlı erkeklerde yaşla ilgili kas kütlesi ve kuvvet eksikliğini ortadan kaldırır. J. Strength Cond. Res. 2011 , 25 , 326-333'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      70. Prasad, S .; Sung, B .; Aggarwal, BB Yaşa bağlı kronik hastalıklar, eski tıp gerektirir: Kronik inflamasyonun rolü. Önceki. Med. 2012 , 54 , S29 – S37. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      71. Imai, T .; Nakamura, M .; Ando, ​​F .; Shimokata, H. Japonya'da toplumda yaşayan nüfus tarafından diyet takviyesi kullanımı: Ulusal Uzun Ömür Bilimleri Enstitüsü (Longsuding Ageing Ageing) (NILS-LSA) verileri. J. Epidemiol. 2006 , 16 , 249-260. [ Google Akademik ] [ CrossRef ]
      72. Martucci, M .; Ostan, R .; Biondi, F .; Bellavista, E .; Fabbri, C .; Bertarelli, C .; Salvioli, S .; Capri, M .; Franceschi, C .; Santoro, A. Akdeniz diyeti ve hormesis paradigması içinde iltihaplanma. Nutr. Rev. 2017 , 75 , 442-455. [ Google Akademik ] [ CrossRef ]
      73. Novotny, JA; Baer, ​​DJ; Khoo, C .; Gebauer, SK; Charron, CS Kızılcık suyu tüketimi, yetişkinlerde kan basıncı ve dolaşımdaki C-reaktif protein, trigliserit ve glikoz konsantrasyonları dahil olmak üzere kardiyometabolik risk belirteçlerini azaltır. J. Nutr. 2015 , 145 , 1185–1193'te açıklanmaktadır. [ Google Akademik ] [ CrossRef ]
      74. Shukitt-Hale, B .; Bielinski, DF; Lau, FC; Willis, LM; Carey, AN; Joseph, JA Çileklerin yaşlanmada biliş, motor davranış ve nöronal fonksiyon üzerindeki yararlı etkileri. Br. J. Nutr. 2015 , 114 , 1542–1549. [ Google Akademik ] [ CrossRef ]
      75. Peng, C.-H .; Liu, L.-K .; Chuang, C.-M .; Chyau, C.-C .; Huang, C.-N .; Wang, C.-J. Dut suyu özleri, bir anti-obezite etkisine ve hepatik lipogenezi inhibe etme ve lipolizi destekleme yeteneğine sahiptir. J. Agric. Food Chem. 2011 , 59 , 2663-2671. [ Google Akademik ] [ CrossRef ]
      76. Xia, X .; Ling, W .; Ma, J .; Xia, M .; Hou, M .; Wang, Q .; Zhu, H .; Tang, Z. Siyah pirinçten antosiyanin bakımından zengin bir ekstre, apolipoprotein E eksikliği olan farelerde aterosklerotik plak stabilizasyonunu arttırır. J. Nutr. 2006 , 136 , 2220-225. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      77. Boirie, Y .; Morio, B .; Caumon, E .; Cano, NJ Yaşlılarda beslenme ve protein enerjisi homeostazı. Mech. Yaşlanma Dev. 2014 , 136 , 76-84. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      78. Solerte, SB; Gazzaruso, C .; Bonacasa, R .; Rondanelli, M .; Zamboni, M .; Basso, C .; Locatelli, E .; Schifino, N .; Giustina, A .; Fioravanti, M. Oral amino asit karışımları içeren besin takviyeleri, sarkopeni olan yaşlı bireylerde tüm vücut yağsız kitle ve insülin duyarlılığını arttırır. Am. J. Cardiol. 2008 , 101 , S69 – S77. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      79. Bauer, JM; Verlaan, S .; Bautmans, I .; Brandt, K .; Donini, LM; Maggio, M .; McMurdo, ME; Mets, T .; Mühür, C .; Wijers, SL D vitamini ve lösinle zenginleştirilmiş peynir altı suyu proteini besin takviyesinin yaşlı erişkinlerde sarkopeni ölçümleri üzerine etkileri, PROVIDE çalışması: Randomize, çift kör, plasebo kontrollü bir çalışma. J. Am. Med. Dir. Doç. 2015 , 16 , 740-747. [ Google Akademik ] [ CrossRef ] [ PubMed ]
      80. Ikeda, T .; Aizawa, J .; Nagasawa, H .; Gomi, I .; Kugota, H .; Nanjo, K .; Jinno, T .; Masuda, T .; Morita, S. Egzersiz tedavisinin dallı zincirli amino asit takviyesi ile birlikte uzun süreli bakım gerektiren zayıf ve zayıf öncesi yaşlılarda kas güçlendirme üzerindeki etkileri ve fizibilitesi: Çapraz bir çalışma. Baş. Physiol. Nutr. Metab. 2016 , 41 , 438-445. [ Google Akademik ] [ CrossRef ]
      81. Rondanelli, M .; Klersy, C .; Terracol, G .; Talluri, J .; Maugeri, R .; Guido, D .; Faliva, MA; Solerte, BS; Fioravanti, M .; Lukaski, H. Whey proteini, amino asitler ve fiziksel aktivite ile D vitamini takviyesi, yağsız kütle ve gücü, işlevselliği ve yaşam kalitesini arttırır ve sarkopenik yaşlılarda iltihabı azaltır. Am. J. Clin. Nutr. 2016 , 103 , 830–840. [ Google Akademik ] [ CrossRef ]
      82. Hartati, FK; Widjanarko, SB; Widyaningsih, TD; Rifa'i, M. Siyah pirinç ekstraktının antienflamatuar değerlendirmesi, immünokompetan hücreler tarafından üretilen TNF-a, IFN-y ve IL-6 sitokinlerini inhibe eder. Gıda Tarım Immunol. 2017 , 28 , 1116-1125. [ Google Akademik ] [ CrossRef ]
      83. Bruun, JM; Helge, JW; Richelsen, B .; Stallknecht, B. Diyet ve egzersiz, yağ dokusunda düşük dereceli inflamasyonu ve makrofaj infiltrasyonunu azaltır, ancak ciddi obez kişilerde iskelet kasında değil. Am. J. Physiol. Endokrinol. Metab. 2006 , 290 , E961 – E967. [ Google Akademik ] [ CrossRef ]
      84. Pawelec, G .; Adibzadeh, M .; Pohla, H .; Schaudt, K. Immunosenescence: Bağışıklık sisteminin yaşlanması. Immunol. Bugün 1995 , 16 , 420-422. [ Google Akademik ] [ CrossRef ]
      85. Correa, BL; Ornaghi, AP; Muller, GC; Engroff, P .; Lopes, RP; da Silva Filho, IG; Bosch, JA; Bonorino, C .; Bauer, ME Ters CD4: CD8 oranı, yaşlı erişkinlerde zayıf bilişsel ve fonksiyonel durumlar olan sitomegalovirüs ile ilişkilidir. Neuroimmunomodulation 2014 , 21 , 206-212. [ Google Akademik ] [ CrossRef ]

      © 2020 yazarlar tarafından. Lisans Alan MDPI, Basel, İsviçre. Bu makale, Creative Commons Atıf (CC BY) lisansının şartlar ve koşulları altında dağıtılan bir açık erişim makalesidir (http://creativecommons.org/licenses/by/4.0/ ).

      Yorum yap

      Hazırlanıyor...
      X