Duyuru

Collapse
No announcement yet.

PİNE BARK, ÇAM Kabuğu Ekstresi

Collapse
Bu konu sabit bir konudur.
X
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • #31
    Çam Kabuğu Extractı Faydaları Nelerdir- Çam Kabuğu Extractı Pycno Nos


    Çam Kabuğu Extractı Ne İşe Yarar- Doğal Antibiyotik İçin Ne Kullanılmalı


    Çam Kabuğu Nedir- Diğer Ürünler ile Bizim Ürünümüz Arasındaki Farklar


    Nitrik Oksit Arttıran Besinler Nelerdir- Sarımsak Yiyen Neden Yaşlanmaz


    Nitrik Oksit Nedir- Nitrik Oksit Azalırsa Ne Olur, Nasıl Arttırılır


    Nitrik Oksit Nedir- Nitrik Oksit Ne İşe Yarar- Nitrik Oksitin Yararları Nelerdir


    Nitrik Oksit Nedir-, Pycno Nos Hangi Rahatsızlıklara İyi Gelir


    Nitrik Oksit Salınımı Nasıl Artar-, Nitrik Oksit Salınımını Arttıran Gıdalar Nelerdir


    Nitrik Oksitin Önemi Nedir- Sarımsak ve Soğan Nitrik Oksit Oluşumunu Nasıl Arttır


    Pycno Nos Çam Kabuğu Ekstractı Nedir-, Faydalar Nelerdir


    Pycno Nos Çam Kabuğu Nedir- Nitrik Oksit Oluşumu


    Pycno Nos İçeriğinde Ne Var- Hangi Hastalıklara İyi Gelir


    Pycno Nos Kullanıcı Yorumları, Pycno Nos Faydaları Nelerdir


    Pycno Nos Mucizevi Faydaları Nelerdir- Pycno Nos Klinik Araştırmaları


    Pycno Nos Nedir- Çam Kabuğu Extractı Üzerinde Klinik Araştırmalar


    Pycno Nos ve Sarımsağın Faydalar Nelerdir, Pycno Nos Hangi Hastalıklara İyi Gelir


    Pycno Nos Yararları Nelerdir- Pycno Nos Klinik Araştırmaları


    Ven Trombozu Hastalğına Ne İyi Gelir- Kan Sulandırıcı Zararları Nelerdir


    Yüksek Tansiyona Ne İyi Gelir- Pycno Nos Faydaları Nelerdir


    Nitrik Oksit Nedir Rahatlama ve Enerji İçin Ne Yapmalıyız


    Çam Kabuğu Ekstraktı Nedir, Faydaları Nelerdir ?


    İdrar Yolları Enfeksiyonu,İnterstisyel Sistit Neden Olur ? Tedavisi Nedir ?


    Pine Bark Nedir ? Pine Bark Faydaları Nelerdir ?


    Pine Bark Nedir ? Pine Bark Faydaları Nelerdir ?
    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

    Yorum yap


    • #32


      Yorum yap


      • #33


        Yorum yap


        • #34


          Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 19 September 2022, 08:20 ) değiştirilmiştir.

          Yorum yap


          • #35


            Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 22 September 2022, 07:53 ) değiştirilmiştir.

            Yorum yap


            • #36

              Yorum yap


              • #37
                Nitrik oksidin fizyolojik ve fizyopatolojik olaylardaki rolü
                Doç. Dr. Kansu BÜYÜKAFŞAR Mersin Üniversitesi, Tıp Fakültesi, Farmakoloji Ab.D., Mersin


                Bilimdeki keşifler bazen beklenmedik olaylarla ortaya çıkabilir. Bunlardan biri de 70’li yılların sonlarında Dr. Robert F. Furchgott’ın laboratuvarında gerçekleşti. Dr Furchgott’ın iki teknisyeni aynı deney protokolünde birbirine zıt iki veri elde etti; asetilkolin ön kastırılmış tavşan aortasında bir miktar kasılma oluştururken, diğer teknisyen tam tersine gevşeme elde etti. Dikkatli bir gözlemle, Furchgott teknisyenlerinden birinin damarı izole ederken onu bir çubuğa yerleştirdiğini ve hoyratça davrandığını dolayısıyla damar endotelini tahrip ettiğini buna karşılık diğerinin (Zawadzki) daha dikkatli bir preparasyon yaptığını ve damar endoteline zarar vermediğini farketti ve bu şeritlerde asetilkolin gevşeme oluştururken diğer teknisyenin hazırladığı preparatta asetilkolin gevşeme oluşturmadı, tam tersine yüksek konsantrasyonlarda kasılma meydana getirdi. Bunu takiben, Prof. Furchgott basit bir deney protokolü ile damar endotelinin, asetilkolin gevşemesi için zorunlu olduğunu yayımladı (Furchgott ve Zawadzki, 1980). Furchgott, endotelli ve endotelsiz dokuları sandviç halinde organ banyosuna asarak endotelli damardan andotelsiz damara transfer edilebilen ve kısa yarılanma ömürlü bir maddenin bu gevşemeden sorumlu olduğunu ileri sürdü ve ona “endotel-kaynaklı gevşetici faktör” (EDRF) adını verdi (Furchgott ve Zawadzki, 1980). Bu keşfin ardından asetilkolinin oluşturduğu gevşemenin doğası çok geçmeden büyük ilgi topladı. 1983 yılında F. Murad’ın grubu EDRF’nin sGMP bağımlı bir şekilde gevşeme oluşturduğunu gösterdi. Ancak daha önceleri (1977 yılında) yine Murad’ın grubu tarafından NO adlı basit bileşiğin, sGMP düzeylerini artırarak vasküler gevşeme oluşturduğu gösterilmişti. 1986-87 yıllarında Furchgott ve diğer bir araştırıcı L. Ignarro, birbirinden bağımsız olarak EDRF’nin nitrik oksid (NO) olabileceğini iddia ettiler. 1987 yılında da Salvador Moncada’nın grubu, NO’nun L-arginin aminoasidinden sentezlendiğini ve bu sentezin basamaklarını ortaya koydu. Ancak, 1982 yılında beyin dilimlerinde L-argininin sGMP düzeylerini artırdığı gösterilmişti.

                İlginç olarak, göğüs ağrısı çeken Alfred Nobel, kendisinin bir kazanç haline getirdiği dinamitin ham maddesi olan nitrogliserini kullanmak zorunda kalmıştır. İronik olarak, NO’nun biyolojik bir molekül olduğu ve vücutta önemli fizyolojik olaylara katkı sağladığını bulan araştırıcılara 1998 yılında NOBEL Tıp/Fizyoloji Ödülü verilmiştir.


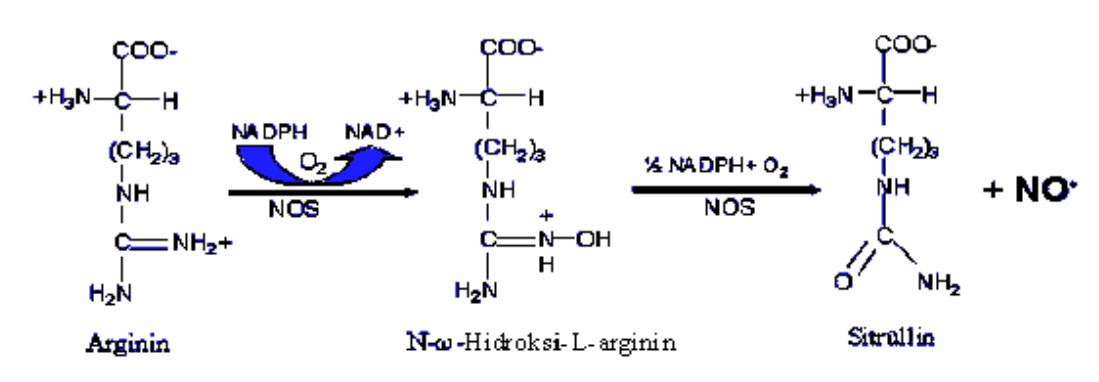
                Şekil 1. Nitrik oksidin NOS enzimi etkisiyle L-arginin aminoasidinden sentezlenmesi.

                Nitrik oksid nedir?
                • Güçlü bir vazodilatör
                • Önemli bir hücre içi sinyalleme ajanı
                • Atipik bir nörotransmiter
                • İmmünolojik sataşmada rol oynayan nonspesifik sitotoksik bir mediyatör
                • Çevresel bir toksin
                • Biyolojik bir ulak olarak fonksiyon gören gaz yapısında ilk molekül

                Fizikokimyasal özellikleri

                Molekül ağırlığı 30 olup gaz tabiyatındadır. Yağda çözünür ve biyolojik membranlardan kolaylıkla geçer. Çok kısa yarılanma ömrüne (3-5 sn) sahiptir. Basit kimyasal yapıya sahip olmasına rağmen oldukça farklı ve zıt etkileri bulunmaktadır. Bu etkiler, çoğunlukla basit gibi görünen nitrik oksid kimyasının komplike doğasından kaynaklanır (Lancaster JR, 2000, Nitric Oxide Biology and Pathobiology).

                NO nasıl ve nereden üretilmektedir?

                1. NO sentezi damarlarda başlıca “shear stres” ile tetiklenir. Bu fenomen, kalbin her sistolde kanı damarlara göndermesi sonucu damar endoteli yüzeyinde oluşturduğu mekanik etki (sürtünme, yalama) olarak ifade edilebilir. Endotel hücreleri bu mekanik etki ile şekil değişikliğine zorlanırken hücre iskeleti aracılığı ile hücre içine sinyaller gönderir. Bunun sonucunda Protein kinaz B (Akt) aktive edilerek eNOS’u fosforile eder. Fosforilasyon, bu enzimin aktivasyonuna neden olur. Sonuçta, endotel hücresinden mütemadiyen NO üretilip salıverilir. Damar endotelinden NO üretimine neden olan en önemli fizyolojik stimulus bu fenomendir (“shear stress”). İlginç olarak bu şekilde NO üretimi için Ca2+’a gerek yoktur, eNOS’un fosforile edilerek aktive edilmesi yeterlidir.
                2. Diğer taraftan hücre içi Ca2+ düzeylerini artıran bileşikler de (asetilkolin, histamin, bradikinin, A-23187, trombin, glutamat, P maddesi, serotonin, noradrenalin, tromboksan A2, endotelin-1, ATP, anjiotensinII, vd.) vasküler endotelyumda kalsiyuma bağımlı bir enzim olan eNOS enzimini aktive eder.
                3. NO, nitrerjik nöronlarda, epitel hücrelerde ve çizgili kaslarda kalsiyuma bağımlı bir şekilde nöronal NOS’tan üretilip salıverilir.
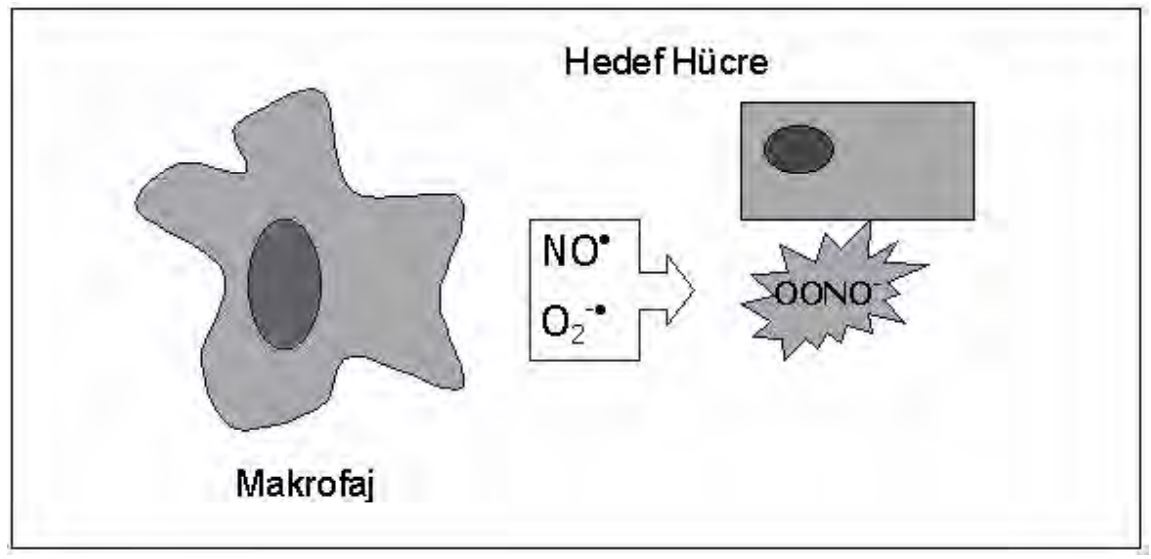
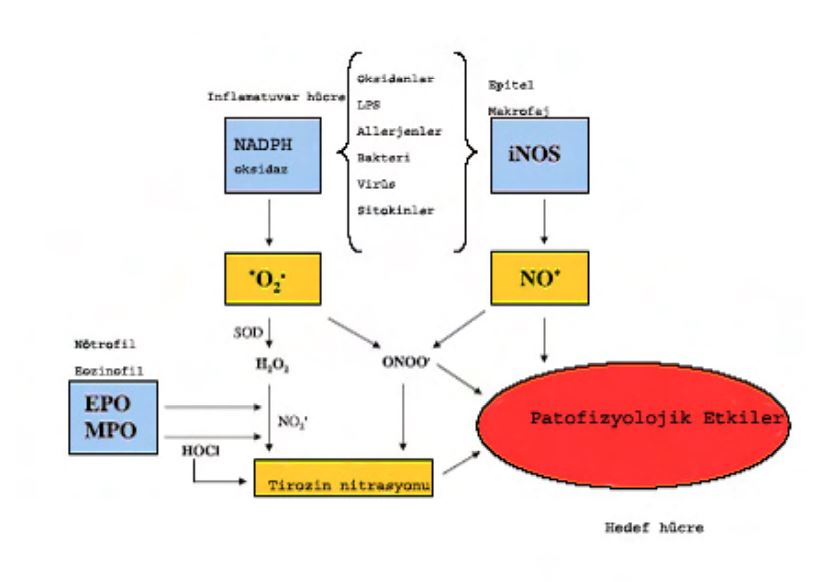
                4. NO, ayrıca immünolojik sataşma sonucu Ca2+’dan bağımsız olarak immün sistem hücreleri tarafından da üretilir ve bu hücrelerin selektif olmayan sitotoksik etkilerine aracılık eder.


                Şekil 2. Makrofajların aktive edilmesi sonucu hedef hücrelerde oluşturduğu spesifik olmayan sitotoksik etkisi (Beckman, J. S.; Koppenol, W. H. 1996).

                5. Ağızdaki bakteriyel flora tükrükte bulunan nitratı nitrite ve daha sonra nitrik okside dönüştürebilir. Diğer taraftan tükrükteki nitritin yutularak mideye geçmesi sonucu midenin asid ortamının etkisiyle NO açığa çıkar. Ayrıca iskemik ve hipoksik şartlarda hücre içi pH’nın aside doğru kayması yine nitriti NO’ye çevirebilir.
                6. Nitrik oksid, non-enzimatik olarak ultraviyole ışığı etkisiyle hücre içi depolarından da salıverilebilir. Bunun fizyolojik önemi henüz bilinmemektedir. UV ışığı etkisiyle NO açığa çıkartan olası adaylar arasında en az,
                • İntrasellüler NO2 - iyonu,
                • R-S-NO bileşikleri ve
                • Işığa hassas nitro grubu içeren bileşiklerin bulunabileceği ileri sürülmektedir (Büyükafşar ve diğ., 1999).

                NOS enzim izoformları

                1. Sinir ve bazı dokularda (akciğer, pankreas, mide ve uterus) bulunan nöronal NOS (nNOS)
                2. İmmünolojik uyaranlarla indüklenen ve hemen hemen bütün çekirdekli hücrelerde bulunan indüklenebilir NOS (iNOS)
                3. Endotel hücrelerde bulunan endotelyal NOS (eNOS)

                NOS inhibitörleri
                L-Arginin analogları:
                L-NMMA (monometilL-arginin), L-NA (nitro-L-arginin), L-NAME (nitro-L-arginin metilesteri).

                L-Arginin analogu olmayanlar: 7-NI (7- nitroindazol, bu madde daha çok nöronal NOS’ u inhibe eder), 1400W, iminoetil-Lornitin (L-NIO), N-(1-iminoetil)-L-lizin, merkaptoetilguanidin, aminoguanidin ve Lkanavanin (daha ziyade iNOS’ u inhibe ederler).


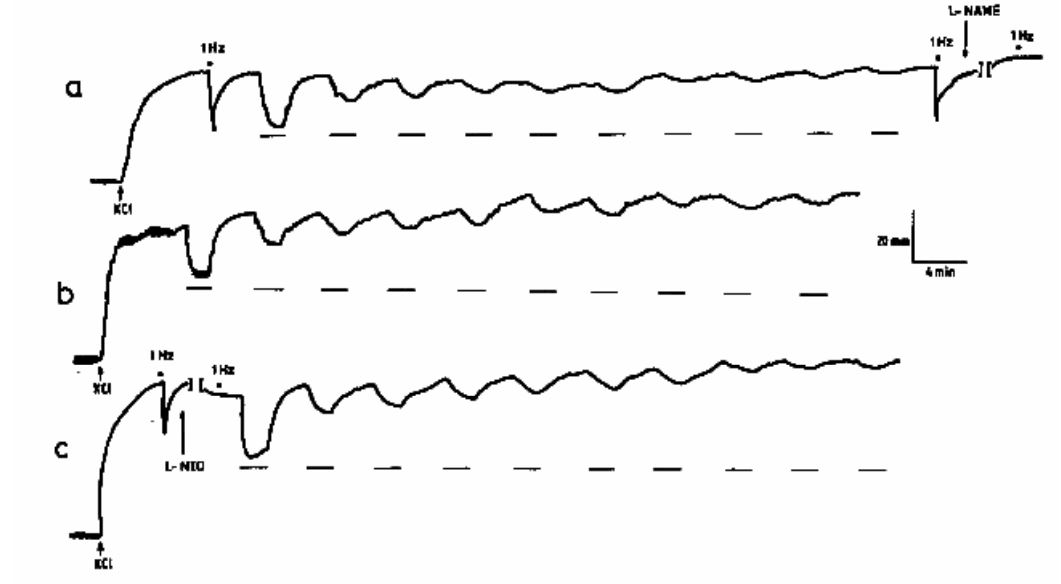
                Şekil 3. Fare gastrik fundusunda ultraviyole (UV, 366 nm) ışığı ile oluşturulan gevşemeler (fotogevşemeler). a: Ardışık UV ışığı uygulamasıyla fotogevşemelerin azalması ve bu azalmanın NO’ya karşı gelişebilecek desensitizasyondan kaynaklanmadığının bir göstergesi, çünkü fotogevşemelerden önce ve sonra uygulanan ve NO sentezini artıran elektriksel uyarı (30 V, 0.5 ms, 1 Hz, 15 s), fotogevşemeleri değiştirmedi. b: Fotogevşemelerin elektriksel uyarıdan etkilenmediğini gösteren trase. c: UV ışığının nitrik oksid sentaz enzimini aktive etmediğini, fakat başka bir kaynaktan NO üretimini gösteren trase. Dokular 10 mM KCl ile ön kastırılmıştır. Yan yana çizilen çizgiler UV ışığı uygulamasını göstermektedir (Büyükafşar ve diğ., 1999).

                I. Nitrik oksidin fizyolojik etkileri

                1. NO’nun kardiyovasküler sistem üzerine etkileri

                Damarlar:
                Güçlü bir damar düz kas gevşeticisidir. Hedef hücrelerde çözünür (sitoplazmik) guanilil siklaza bağlanır ve onun aktivitesini yaklaşık 400 kat artırır. Hedef hücrelerin bazı moleküllerine de bağlanır (guanilil siklazdan bağımsız etkiler). Bu enzimin aktivasyonu ile sGMP açığa çıkar bu da Protein kinaz G’yi aktive eder. Protein kinaz G ile oluşan düz kas gevşemesi başlıca şu mekanizmaları içerir:
                • Ca2+’un hücre içi depolardan salıverilmesinin inhibisyonu
                • Voltaja bağımlı kalsiyum kanalların inhibisyonu
                • Na+ /Ca2+ değiş-tokuşunun aktivasyonu
                • Fosfolipaz C’nin ve IP3 oluşumunun inhibisyonu
                • Ca2+’a bağımlı K+ kanalların aktivasyonu

                Kalp: Kalpte hangi tip NOS bulunmaktadır?
                Kolinerjik sinir uçları ile NANK sinirlerde nöronal NOS’un (NOS-1), immünoreaktivitesi gösterilmiş olmasına rağmen myositler, esasen yüksek miktarda eNOS eksprese edilmektedir (Balligand ve diğ. 1995). Diğer taraftan inflamatuvar sitokinlerle stimüle edildiğinde myositler iNOS enzimini de eksprese etmektedir (Kelly ve diğ., 1996; Balligand ve Cannon, 1997). Koroner arter allograft red reaksiyonlarında iNOS immünoreaktivitesinin belirgin arttığı bildirilmiştir (Szabolcz ve diğ., 1998). Kalp yetmezliği olan hastalarda da iNOS ekspresyonları artmaktadır (Habib ve diğ., 1996; Haywood ve diğ., 1996; Lewis ve diğ., 1996). Ancak kalp yetmezliklerinde ve sitokin sataşmalarında iNOS ekspresyonları artarken eNOS ise downregüle olmaktadır. NO’nun kalpte oluşturduğu etkiler, sGMP’ye bağımlı ve bağımsız etkiler olarak ortaya çıkar. NO’nun hem pozitif hem de negatif inotropik etkisi bulunmaktadır. Ancak sonuç olarak NO, kalp kasılmasını inhibe etme yönünde hareket eder. Bununla uyumlu olarak çeşitli agonistlerle (örneğin, β-agonistleri) oluşturulan pozitif inotropik etki eNOS aktivasyonu (P maddesi ile) veya NO vericileri ile azalmaktadır. Ayrıca NOS inhibisyonu izoproterenolün (+) inotropik ve aritmojenik etkilerini artırır (Balligand ve diğ., 1993; Gauthier ve diğ., 1998). NO, ayrıca myositlerin mitokondriyel solunumunu inhibe ederek kalbin oksijen tüketimini azaltır (Shen ve diğ., 1994; Oddis ve Finkel, 1995).

                Trombositler: Bu hücreler yaklaşık 2 m’lik küçük kan hücreleridir. Nükleusları bulunmayan bu hücreler eser miktarda DNA ve çok az miktarda RNA içermektedir. NOS’u kodlayan cDNA fragmanlarının tanımlanması ancak PCR çoğaltmasıyla mümkün olabilmiştir. Trombositler eNOS mRNA’sı içerirken nNOS’ u eksprese etmez. iNOS mRNA’sının varlığı tartışmalıdır. Trombositlerin de novo protein sentez etme kapasiteleri sınırlıdır ve bir çok proteinini megakaryositlerden temin ederler.

                1986 yılında Azuma ve diğ., EDRF’nin trombosit agregasyonunun bir inhibitörü olabileceğini bildirdi. Daha sonra trombosit NOS’u saflaştırılmıştır (Murunganandam ve Mutus, 1994). EDRF ile NO’nun benzer olduğunun bildirilmesinde sonra, NO’in trombosit agregasyonu üzerindeki etkileri daha detaylı araştırıldı. 1990-1993 yılları arasında trombosit kaynaklı NOS’un farmakolojik özellikleri incelendi ve aktive edilmiş trombositlerin NO salıverdiği selektif porfirinik bir mikrosensörle gösterildi (Malinski ve diğ., 1993). NO, trombositlerde sGMP düzeylerini yükselterek hem in vivo hem de in vitro olarak trombosit adezyon ve agregasyonunu inhibe eder. Prostasiklinle beraber en önemli iki inhibitör faktördür. Uygun NO vericileri gelecekte ümit vaat edici antitrombotik ajanlar olabilir.

                2. NO’nun gastrointestinal sistem üzerine etkileri

                Uzun yıllar otonomik sinirlerin sadece asetilkolin ve noradrenalin salıverdiğine inanılmıştı. Ancak Burnstock ve diğ. (1963 ve 1964) kolinerjik ve adrenerjik blokaj varlığında barsak düz kasın hiperpolarize olduğu tespit ettiler ve 1986 yılında Burnstock, ve Lundberg ile diğ., non-adrenerjik nonkolinerjik (NANK) terimini kullanmışlardır. NO’nun periferik otonomik sinirlerden salıverilen NANK bir mediyatör olabileceği ilk kez 1990 yılında gösterilmiştir (Gillespie ve diğ.). Ancak 1988’de Garthweith ve diğ., SSS’de NO’nun bir nörotransmiter olabileceğini bildirmişlerdi. NO, gastrointestinal sistemde bir takım hücreler üzerine etki ederek sekresyon, tonus ve motilite, kan akımı, elektrolid ve su absorpsiyonu, mukozal koruma ve inflamasyon gibi olaylara karışır. Sayılan bu etkilere genellikle guanilil siklaz aktivasyonu aracılık eder. NO, mide kan akımını artırır. NO donöreri vagal uyarı veya histaminle indüklenen asid salgılanmasını azaltabilir. Mide tonus ve motilitesini baskılar, izosorbid dinitrat ve Snitrozo-N-asetilpenisilamin (SNAP) gibi NO salıvericileri, duodenal mukus sekresyonunu artırarak gastrik aside karşı mukozal koruma sağlar. L-arginin:NO yolağı barsak elektrolid ve su absorpsiyon/sekresyon olaylarına karışır. NO’nun hem proabsorptif hem de sekretuvar olduğu bildirilmiştir. Ancak fizyolojik şartlarda NO-bağımlı proabsorptif bir tonus bulunmaktadır. Fakat bazı patolojik durumlarda, örneğin, fare, sıçan, kobay ve maymun inflamatuvar barsak hastalık modelleri ile insan Crohn hastalığında ve ülseratif kolitiste yüksek miktarda salgılanan NO, barsaklarda net sekresyon yapmaktadır. Dolayısıyla, NO’ nun bir takım intestinal inflamasyon modelleri ile ilişkili diyareye katkı sağlamaktadır. Diğer taraftan, hint yağı (castor oil), fenoftalein, bisakodil, MgSO4, safra tuzları, senna ve cascara ile oluşturulan laksatif ve pürgatif etkilerde NOS aktivitesinin arttığı bildirilmiştir. L-NAME ve L-NMMA, bu ajanlarla oluşturulan laksatif/pürgatif etkiyi antagonize eder (Gaginella ve diğ., 1994; Mascolo ve diğ., 1994).

                NO, midenin besin alınımı sırasında minumum basınç ve maksimum gevşeme yanıtı olan “adaptif gevşeme” fenomeninde en önemli rolü oynayan nörotransmiterdir (Desai ve diğ., 1991). NO, post-ganglioner parasempatik orijinli nöronların ucundan salıverilir ve gastrointestinal sistem boyunca (özofagus, alt özofageal sfinkter, mide, pilorik sfinkter, duodenum safra kesesi, Oddi sfinkteri, ileum, kolon, rektum ve anal sfinkter) tonus ve motiliteyi düzenler. Önemli bir inhibitör mediyatördür.

                3. NO’nun üriner sistem üzerine etkileri

                Böbrekler: Nitrik oksid, renal kan akımı, renal otoregülasyon, glomerüler filtrasyon, renin salgılanması ve tuz ıtrahı gibi renal fonksiyonların kontrolünde en önemli parakrin modülatör ve mediyatördür. NO ayrıca, diyabetik nefropati, inflamatuvar glomerüler bozukluk, septik şokta görülen akut böbrek yetmezliği, kronik böbrek yetmezliği, ilaçların nefrotoksik etkileri gibi bir takım böbrek bozukluğu durumlarında da önemli rol oynar. NO, bazen hemodinamik fonksiyonlarından dolayı faydalı olabilirken iNOS’tan salgılandığı durumlardaki yüksek miktarlarda zararlı olabilmektedir. NO, afferent arteriol tonusu üzerinde efferent arteriole göre daha fazla rol oynar. NOS inhibitörleri afferent arteriolleri daha fazla büzer. NO, renin salgılanmasını güçlü bir şekilde uyarır. Bu etkide sGMP’nin katkısı bulunmaktadır.

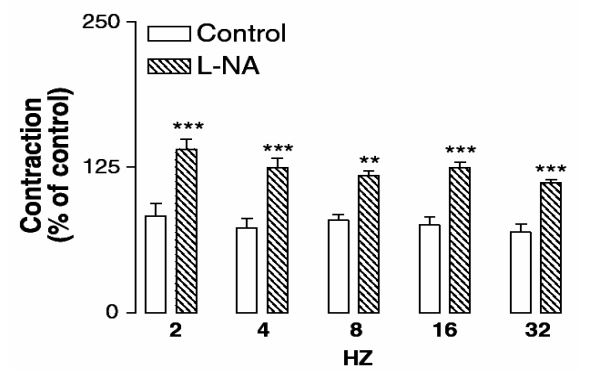
                Mesane ve Üreter: Nitrik oksid hem mesane de hem de üreterde nitrerjik sinirlerden salıverilen inhibitör bir nöromediyatör olarak etki etmektedir.


                Şekil 4. Koyun üreterinde elektriksel uyarı ile oluşturulan kasılmaların NOS inhibitörü, nitroarginin (L-NA) varlığında potansiyelize edilmesi. Bu bulgu, üreter dokusunda NO’nun inhibitör bir mediyatör olduğunu göstermektedir (Levent ve Büyükafşar, 2004).

                4. NO’nun santral sinir sistemi üzerine etkisi

                NOS enzimini serebellum, hipotalamus, orta beyin, striatum ve hipokampusta yüksek düzeyde bulunurken medulla oblongatada düşük düzeyde bulunduğu saptanmıştır. NOS’un kaynağı nöron ve endotel hücrelerdir. NO’nun öğrenme ve bellekte önemli rol oynayan LTP (long-term potentiation) (hipokampusta) ve LTD’ye (long-term depression) (serebellumda) neden olduğu gösterilmiştir. Glutamat, NMDA reseptörlerini aktive ederek öğrenme ve belleğin temeli olan LTP’yi NO üreterek oluşturur. Ancak glutamat reseptörlerin aşırı stimülasyonu sonucunda fazla miktarda oluşturulan NO’nun nörodejenaratif hasarlanmalara neden olduğu ileri sürülmektedir. 1974 yılında glutamatın serebellar dilimlerde sGMP düzeylerini artırdığı bildirilmiştir (Ferendelli ve diğ., 1974). 1977 yılında ise Miki ve diğ. NO’nun çözünür guanilil siklazı aktive ettiği gösterirken, Deguchi, bu etkinin hemoglobin (Hb) ile inhibe edildiği gösterdi (1977). Diğer taraftan nöroblastoma hücresinde çözünür guanilil siklaz aktivatörünün Larginin olabileceği önerildi (Deguchi ve Yoshioka, 1982). Detaylı çalışmaların sonucu beyinde eksitatör aminoasidlerin beyin gelişimi, öğrenme ve hafıza üzerine olan etkilerine NO’in önemli ölçüde aracılık ettiğini göstermiştir. NO’nun, hipotalamo-hipofizeal aksta da bir rol oynadığı bildirilmiştir çünkü, beyine injekte edilen NO donörleri CRH salıverilmesini artırır.

                5. NO’nun fötal yaşamdan yeni-doğana geçişteki kritik rolü

                Fetusta yüksek dirençli ve düşük akımlı dolaşımdan, düşük dirençli yüksek akımlı dolaşıma geçiş oldukça kompleks bir proçestir ve vazokonstriktör mediyatörlerin “downregulation” ile vazodilatör mediyatörlerin “upregulation”u eşzamanlı gerçekleşir. Buradaki en önemli vazodilatör mediyatör NO’tir. eNOS protein ve mRNA düzeylerinin fötal sıçanlarda eksprese edildikleri ve doğuma yakın bir dönemde dramatik olarak arttığı tespit edilmiştir. Bu artışın doğumdan hemen sonra gerekli NO düzeylerini temin etmek olduğu ileri sürülmüştür. Nitrik oksidin doğumdan hemen sonra yenidoğanın akciğerlerine ilk oksijeni inhale etmesiyle sentezi artar ve bu gaz mediyatörün mitokondriyel solunumun olgunlaşmasında kritik role sahip olduğu gösterilmiştir, çünkü, NO doğumdan hemen sonraki dakikalarda mitokondriyel kompleks II-III aktivitesini artırarak ATP oluşumunu hızlandırır ve böylece beynin maturasyonunu sağlar (Almeida A ve diğ., 1999).

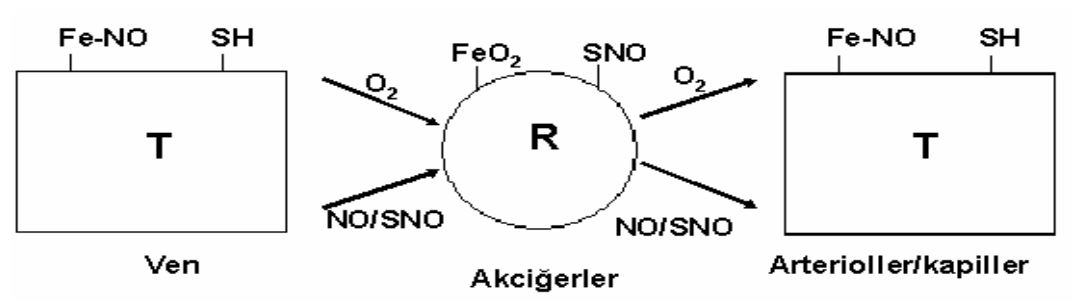
                Hemoglobin ve nitrik oksid etkileşmesi: Hemoglobinin (Hb) NO’yu bağlaması esasında bir deaktivasyon olayı olmayabilir. Olasılıkla, Hb maksimum oksijen dağıtımı için NO’ den faydalanıyor;. şöyle ki; R halinden (oksijenize halden), T (deoksijenize) haline geçişte NO, cysb-93’e transfer olarak S-nitrozo-Hb oluşuyor. Oksijenin transferi gerçekleşirken, dokudaki kan akımını NO sayesinde hızlandırılır ve böylelikle maksimum gaz alış-verişi gerçekleştirilmiş olur (McMahon ve diğ., 2000).

                6. NO’nun solunum sistemi üzerine etkileri

                Nitrik oksidin solunum yollarının rezistansını ayarlamada EpDRF (İlhan ve Şahin, 1986) ile beraber önemli rolü bulunmaktadır. Sağlıklı gönüllülerde burundan soluyan insanların ekspiryum havasında ağızdan soluyanlara göre anlamlı ölçüde fazla NO düzeyleri tespit edilmiştir. Paranazal sinusler, yüksek miktarda NO üretir (Lundberg ve diğ. 1995) ve NOS inhibitörü, L-NAME bunu inhibe eder. İlginç olarak NO düzeyleri insan ve diğer primatlarda yüksek (Schedin ve diğ., 1997) iken paranazal sinüsü bulunmayan veya çok az bulunan baboon maymunlarında çok düşük bulunmuştur (Lewandowski ve diğ., 1998). Bazı solunum yolu hastalıklarında da ekspiryum havasındaki NO düzeyleri değişmektedir.

                7. NO’nun genital sistem üzerine etkileri

                Korpus kavernozum ve klitoris: Nitrik oksid (NO), penis ve klitoris gibi erektil dokulardaki nitrerjik nörotransmisyonda rol oynar; bu yapıların ereksiyonunda NO, esas mediyatördür (Gillespie ve diğ., 1972; Cellek ve Moncada, 1998). Erektil disfonksiyonda (örneğin diyabette olduğu gibi) penisteki (korpus kavernosumdaki) NO sentezi bozulmuştur (Göçmen ve diğ., 1998). NO etkisini fosfodiesteraz enzimini inhibe ederek artıran sildenafil ve benzerleri erektil disfonksiyon tedavisinde yoğun olarak kullanılmaktadır.


                Şekil 5. Hemoglobinin (Hb) ven, akciğer ve arteriol/kapiller düzeyde NO ile reakisyonları. Arteriyol/kapiller düzeyde Hb, bünyesindeki NO'yu salıvererek doku perfüzyonu ve gaz transferini artırmaktadır .

                8. NO’nun hücre solunumu ve mitokondriyel elektron transport zinciri üzerine etkisi

                NO, çözünür guanilil siklazı aktive ettiği konsantrasyonlarda (nM seviyelerinde) mitokondriyel elektron transport zincirinin terminal komponenti olan sitokrom c oksidaz enzimini de geri-dönüşümlü ve O2 ile yarışmalı bir şekilde inhibe eder (Brown GC ve Cooper CE, 1994). Sitokrom oksidaz enzimi memelilerde hücresel oksijenin %90’nından fazlasını tüketir. Bu enzim sitokrom c-Fe2+’yi sitokrom c-Fe3+’e oksidlerken moleküler oksijeni de suya redükler. Bu sırada mitokondriyel matriksten membranlar arası boşluğa H+ transfer edilir. Bu iyonlarının tekrar matrikse transferi ATP sentezi ile kenetlidir. NO, sitokrom oksidaz enzimini inhibe ederek, bir anlamda “metabolik hipoksi” oluşturmaktadır. Bu tür metabolik hipoksinin çok geniş biyolojik sonuçlarının olabileceği bildirilmektedir. Sitokrom c oksidazın olasılıkla NO redüktazdan geliştiği (evrimleştiği) düşünülürse, NO’nun sitokrom c oksidaza bağlanması olayı, basitçe evrimsel bir kalıntıdır (Moncada S, 2000). İlginç olarak, NO tarafından hücre solunumu inhibe edildiği zaman mitokondriden bir Ca2+ çıkışı meydana gelir, bu da Ca2+-bağımlı proteazların aktive olmasına neden olur (Xu ve diğ., 2005). İntrasellüler Ca2+ düzeyindeki artışlar mitokondriyal dehidrojenazları aktive edebilir. Bu bağlamda, akut hipoksi hem Ca2+’un hücre içine girişine hem de NO sentezinin artışına öncülük edebilir, bu da ortamın O2 konsantrasyonu azaldıkça hücrenin O2 ihtiyacını azaltarak kendini adapte ettiğini önerebilir. Hayvan çalışmalarında endojen NO sentezinin inhibisyonunun vücudun total oksijen tüketimini artırdığı gösterilmiştir. Hücre solunumunun kontrolünde rol oynayan Ca2+-bağımlı NOS’un, endotelyal tip III NOS veya izole mitokondrilerde O2 tüketimini inhibe edebilen Ca2+-bağımlı bir NOS izoformunun olup olmadığı tam olarak bilinmemektedir.

                II. NO’nun patofizyolojik olaylardaki rolü

                İskemi ve reperfüzyon hasarlanmaları, inme, sepsis, nörotoksisite, makrofaj kaynaklı hasarlanma, vasküler hastalıklar, diyabet, otoimmün hastalıklar, inflamasyon, ağrı, kanser, respiratuvar hastalıklar, pulmoner hipertansiyon gibi bir çok çeşit patolojilerde NO’nun rolünün olabileceği bildirilmiştir. İnflamasyon kısaca vücudun hasar verici stimulusa karşı bir savunma mekanizması olarak tanımlanabilir ve NO’in bu yanıtta major mediyatör olabileceğine dair güçlü kanıtlar mevcuttur. Diğer taraftan NO’nun antiinflamatuvar olabileceği de bildirilmektedir. NO’nun fizyolojik etkisi esasında koruyucu ve antiinflamatuvar yöndedir. Ancak yüksek miktarlarda salıverildiği zaman ve ortamın redoks ve oksijenasyon durumuna bağlı olarak hedef hücrelerde peroksinitrit oluşumu üzerinde moleküler hedeflerin nitrozilasyonu/ nitrasyonuna neden olabilir. Ayrıca mitokondriyel solunumu, DNA sentezini inhibe edebilir. Nitekim makrofajların oluşturduğu nonspesifik sitotoksisiteye aracılık eder. İnflamasyonda görülen Lewis’in 3’lü (kızarıklık, ödem ve sıcaklık) yanıtına aracılık eden moleküllerden biri de NO’dur. Kızarma ve sıcaklık artışı vazodilatasyondan kaynaklanır. Ödem ise kapiller permeabilite artışından meydana gelir. Yabanıl sıçanlarda LPS uygulamasıyla akciğerde lökosit birikimi ve bunların endotel hücrelere yapışması, iNOS’u silinmiş sıçanlarda görülmemiştir (Hickey ve diğ., 1997). Nitrozatif stres sırasında NO’dan oluşan ONOO- , DNA tek zincir kırılmasına neden olur. Bu durumda nükleer bir enzim olan poliADP riboz sentetaz (PARS) aktive olur. PARS, sübstratı NAD+ ’yi tüketir. Sonuçta glikoliz hızı, elektron transportu ve ATP oluşumu azalır, bu da akut hücre disfonksiyonuna ve hücre ölümüne neden olur (Szabo ve Dawson, 1998). Kronik inflamasyon, fibroblast ve küçük kan damarlarının proliferasyonu ve kronik inflamatuvar hücrelerin (lenfosit, plazma hücreleri ve makrofajlar gibi) infiltrasyonu ile karakterizedir. Bütünüyle immün sistem hücreleri ile yönetildiği için de, akut inflamasyondan ayrılır. NO’nun deney hayvanlarındaki kronik hastalık modellerinde rol oynadığı açık bir şekilde gösterilmiştir. NO, sinoviyositlerde TNF-α üretimini ve onun kondrosit fonksiyonları üzerine olumsuz etkisini stimüle eder. Diğer taraftan NOS inhibisyonu kemirgen sistemik lupus eritematozus (SLE) modellerinde faydalı olduğu bildirilmiştir (Oates ve diğ., 1997). Sıçan ve fare Langerhands adacık hücrelerinin NO ile harap edilmesi ve insülin salgılanmasındaki etkileri, NO’nun insan diayabetinde rol oynadığına dair güçlü kanıt oluşturabilir (Kröncke ve diğ., 1998). NO, inflamatuvar barsak hastalığındaki mukozal hasarlanmaya katkı sağladığı bildirilmiştir (Whittle, 1997).

                Aterosklerotik plaklarda iNOS’un bulunması, bu pataolojide NO’nun rolünü ortaya koymaktadır. Aktive edilmiş makrofajların NO ürettiği ve adacık hücrelerine karşı sitotoksik olduğu gösterilmiştir (Kröncke ve diğ., 1991). Tip 1 diyabetin klinik belirtilerin görünmediği prediyabetik fazında serumda adacık hücrelerine karşı spesifik antikorların olduğu tespit edilmiştir (Eisenbarth ve diğ., 1986). Ancak diyabetin görülmediği insanların kanlarında adacık hücrelerine karşı yöneltilmiş oto-antikorlar saptanmıştır. Dolayısıyla hümoral otoreaktiviteye ek olarak hücre aracılı immün reaksiyonlar, adacık harabiyetinden sorumlu olabilir. Adacık hücrelerine infiltre olan makrofajlarda iNOS aktivitesi oluşmakta ve yoğun olarak üretilen NO’nun söz konusu harabiyetten sorumlu olduğu gösterilmiştir (Kolb ve KolbBachofen, 1992; McDaniel, 1996). Diyabet eğilimli BB tip sıçanlarda adacık hücreler infiltre olan makrofajların yoğun olarak iNOS proteinini eksprese ettikleri bulunmuştur.

                NO’nun rol oynadığı patolojik durumları gösteren çalışmalar

                Romatik hastalıklar

                Sistemik lupus eritamatozus: Belmont ve diğ., 1997; Wigand ve diğ. 1997 Vaskülit: Kausalya ve Nath, 1998 Romatoid artrit: McInnes ve diğ., 1996; Grabowski ve diğ., 1997; Wigand ve diğ., 1997 Osteoartrit: Amin ve diğ., 1995; McInnes ve diğ., 1996; Grabowski ve diğ., 1997

                İnflamatuvar Hava Yolu Hastalıkları
                Astma: Hamid ve diğ., 1993; Barnes 1996 Solunum yolu infeksiyonları: McInnes ve diğ., 1998 İdiopatik pulmoner fibrozis: Saleh ve diğ., 1997 Bronşiektazi: Tracey ve diğ., 1994

                Gastrointestinal Sistem
                Inflamatuvar barsak sendromu: Mourelle ve diğ., 1995; Yazar ve diğ., 2005 Ülseratif kolitis: Godkin ve diğ., 1996; Singer ve diğ., 1996 Chron hastalığı: Singer ve diğ., 1996; Gupta ve diğ.,1998; Herulf ve diğ., 1998 Divertikülit: Singer ve diğ., 1996 Nekrotizan enterokolit: Ford ve diğ., 1997 Çöliyak hastalığı: Ter Steege ve diğ., 1997 H. pylorii ile ilişkili kronik non-atrofik gastrit: Mannick ve diğ., 1996

                Böbrek
                Glomerülonefrit: Kashem ve diğ., 1996 Lupus nefritis: Wang ve diğ., 1997

                Pankreas
                Diyabet: Corbett ve diğ., 1993 Pankreatitis: Vara ve diğ., 1995

                Karaciğer
                Kronik hepatit: Cuzzocrea ve diğ., 1998

                Mesane
                İnfeksiyoz ve non-infeksiyoz sistit: Lundberg ve diğ., 1996

                Santral ve Periferik Sinir sistemi
                Parkinson hastalığı: Hirsch ve diğ., 1998
                Multipl skleroz: Johnson ve diğ., 1995, De Groot ve diğ., 1997
                Şiddetli AIDS demansı: Adamson ve diğ., 1996

                Cilt
                Psöriyazis: Brunch-Gerharz ve diğ., 1996
                Kütanöz lupus eritamotozus: Khun ve diğ., 1998
                Sistemik skleroz: Yamamoto ve diğ., 1998
                Dermatitis: Rowe ve diğ., 1997

                Ateroskleroz
                Buttery ve diğ., 1996; Lafond-Walker ve diğ., 1997;
                Ross, 1999.
                Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                Yorum yap


                • #38
                  Nitrik oksit ve kardiyovasküler sistem
                  Prof. Dr. Sibel GÖKSEL
                  Ege Üniversitesi, Tıp Fakültesi, Farmakoloji Ab.D., İzmir


                  Nitrik oksit (NO), organizmada yaygın olarak bulunan ve birçok hücre ve dokuda doğal olarak sentezlenen bir moleküldür. NO’in normal fizyolojik olayları düzenlenmesinde ve çeşitli patolojik süreçlerin gelişiminde önemli rol oynadığı sistemlerden birisi de kardiyovasküler sistemdir. Normal homeostazı sağlamada NO’in aracılık ettiği temel olaylar miyokard kontraktilitesi, vasküler tonus, trombositendotel etkileşimleri ve lökosit adezyonunun düzenlenmesidir. Dolayısıyla farklı hücrelerde NO’in üretiminde veya etkinliğinde bir bozuklukla seyreden NO dengesindeki değişiklikler birçok fizyopatolojik sürece katkıda bulunmaktadır. Örneğin septik şokta gelişen hipotansiyon ve miyokard depresyonundan aşırı NO yapımı sorumludur diğer taraftan esansiyel hipertansiyonda patogenezde endotelial NO üretiminde veya etkinliğinde azalmanın söz konusu olduğu düşünülmektedir (Kirkebøen ve Strand, 1999). Vasküler yapıda NO üretiminin azalması, sonuçta trombositendotel etkileşimi ve vasküler düz kasın proliferasyonu üstünde NO aracılı inhibitör etkinin azalmasına yol açarak aterojenik potansiyeli artırır. NO biyolojisinde bozulma ile karakterize olan bazı kardiyovasküler hastalıklar Tablo 1’de verilmiştir.

                  Tablo 1. Nitrik oksit biyolojisindeki değişikliklerin rol aldığı kardiyovasküler bozukluklar.
                  • Septik şok
                  • Miyokard kontraktilitesinde bozukluk durumları
                  • İskemi-reperfüzyon hasarı
                  • Ateroskleroz
                  • Diabetik anjiopati
                  • Esansiyel hipertansiyon
                  • Pulmoner hipertansiyon
                  • Konjestif kalp yetmezliği
                  • Gebelikte preeklampsi

                  Septik şok
                  Fizyopatolojide NO


                  Septik şokta gözlenen kontraktil ajanlara vasküler yanıt azlığı, hipotansiyon ve miyokard depresyonu tablosundan aşırı NO üretimi sorumlu tutulmaktadır (Kirkebøen ve Strand, 1999). Gram (-) bakteri enfeksiyonlarında bakteri hücre duvarı komponentlerinden olan lipopolisakkarid veya başka bir deyişle endotoksinin dolaşıma salınması proinflamatuar sitokinlerin üretimini uyarır. Endotoksinin kendisi ve sitokinler makrofajlarda ve vasküler düz kasta indüklenebilir NO üretiminden sorumlu NO sentaz (iNOS) enzimini direkt gen transkripsiyonu basamağında uyarır ve in vitro NO üretimini artırır (Nathan ve Xie, 1994). Endotoksinle karşılaşmadan sonra iNOS’un indüksiyonu saatler almaktadır, ancak iNOS bir kez indüklendiğinde aşırı miktarlarda NO sentezlenmesini sağlar ve sonuçta septik vazodilatasyon ve hipotansiyon ortaya çıkar. Septik şokun karakteristik bir özelliği de sempatik sinir uyarısına verilen vasküler yanıtın bozulmasıdır, ve bunda da NO aracılığı söz konusudur (Gonzales ve ark., 1992). Vasküler düz kasta genel bir kontraktil defekt saptanmaktadır ve endotoksinle iNOS indüksiyonu sonucu oluşan endotelial ve nonendotelial kaynaklı aşırı NO vasküler “yanıtsızlık”ta temel aracı moleküldür (Ülker ve ark., 2001)

                  Terapötik yaklaşımda NO

                  NO’in septik şokun fizyopatolojisinde açık bir rolü olduğunun gözlenmesi, septik şokun tedavisinde NO’in aşırı üretiminin antagonize edilmesi mantığını gündeme getirmiştir ve bu mantıkla yapılan ilk yaklaşım iNOS’un kompetetif inhibitörleri olarak L-NNMA, L-NA, L-NNA gibi L-arjinin analoglarının kullanılmasıdır. Başlangıçta bu maddelerle yapılan hayvan çalışmaları umut vaadetmiştir, sonraki çalışmalar değerlendirildiğinde elde edilen veriler çok değişkendir, bu değişkenliğin nedeni hayvan modellerinin farklılığı veya uygulanan dozların çeşitliliğine bağlanmaktadır (Kirkebøen ve Strand, 1999). Ancak NO’in sepsiste klinik tabloda önem kazanan vazodilatasyon, hipotansiyon, vazopresör ajanlara yanıtsızlık ve miyokard kontraktilitesinde bozulma gibi negatif etkilerine karşı vital organlarda mikroperfüzyonun düzenlenmesi, küçük arteriyollerde vasküler tormbozun önlenmesi ve patojene karşı konakçının savunmasında rol oynama gibi pozitif etkileri de bulunmaktadır. İnsan çalışmaları hayvan çalışmalarına oranla daha çok tutarlılık göstermektedir; ancak son derece sınırlı sayıda hasta içerirler. Nonselektif NOS inhibitörleriyle yapılan Faz III klinik bir çalışmada bu ilaçların ortalama arteriyel kan basıncını hızla 50 mmHg’dan 90 mmHg’a çıkardığı, sistemik damar direncini dramatik bir şekilde yükselttiği, ve kardiak “output”u düşürdüğü gözlenmiştir; ancak hemodinamik düzelmeye rağmen hastalarda mortalite %100 olarak bildirilmiştir (Geroulanos ve ark., 1992). Klinik çalışmalar değerlendirildiğinde örneklem sayısının azlığı nedeniyle morbidite ve mortalite üstüne bu ilaçların etkisini değerlendirmek mümkün olamamıştır (Wolfe ve Dasta, 1995; Cobb, 2001). Hatta bir hayvan sepsis modelinde L-NNMA’in yüksek dozlarda mortalitede artışa neden olduğu bildirilmiş ve bu ilaçların terapötik pencerelerinin darlığı vurgulanmıştır (Nava ve ark., 1992). Septik şokta NO’in ve NOS inhibitörlerinin etkisinin daha iyi anlaşılabilmesi için toksik olmayan, kısa etkili, dozu titre edilebilir nitelikte ve daha selektif iNOS inhibitörlerinin geliştirilmesi ve denenmesi gerekmektedir.

                  iNOS inhibisyonu için denenen başka bir yaklaşım da glukokortikoidlerin kullanımıdır; ancak saatler süren iNOS indüksiyonunun etkin bir şekilde inhibe edilebilmesi için glukokortikoidin endotoksinle karşılaşma anında veya daha önce uygulanmış olması gerekmektedir (Radomski ve ark., 1990). Glukokortikoid etkisini araştıran klinik çalışmalarda mortalite üstüne pozitif veya negatif etki de, etkisizlik de bildirilmiştir (Kirkebøen ve Strand, 1999).

                  Sepsiste aşırı NO üretimini bloke etmek için diğer bir yaklaşım proinflamatuar ve antiinflamatuar sitopkinler arasındaki dengeyi düzenlemektir (Szabo C, 1995). Bu amaçla TNF-α, IL-1 veya IF-γ gibi sitokinlere karşı monoklonal antikor kullanımı denenmiştir. NOS’ı inhibe etmek için enzimatik kofaktörlerinin (örneğin tetrahidrobiopterin) üretiminin inhibisyonu bir diğer yaklaşımdır, ancak deneysel sepsis modellerinde bu konu çalışılmamıştır.

                  Diğer taraftan aşırı üretilen NO’in etkilerini direkt ortadan kaldırmak için NO’in hedef molekülü olan guanilat siklazın nonselektif inhibitörü olan metilen mavisinin kullanımı da denenmiştir. Katekolaminlere refrakter septik şoktaki hastalarda metilen mavisinin ortalama arter basıncını ve sistemik damar direncini düzelttiği, ancak kardiak outputu azalttığı bildirilmiştir (Schneider ve ark., 1992). Metilen mavisinin yararlı etkileri geçicidir ve yaklaşık 3 saat içinde hemodinamik parametreler uygulama öncesi değerlere döner. Daha uzun süreli etkiyi gözlemek için septik şoklu bir hastada 44 saat metilen mavisi infüzyonla uygulandığında miyokard kontraktilitesini düzelttiği gözlenmiştir (Daemen-Gubbels ve ark., 1995). Ancak metilen mavisi toksik bir maddedir, methemoglobinemi ve ciltte mavigri renklenme yapabilir ve bu tablo siyanozla karıştırılabilir.

                  Miyokard kontraktilitesinde bozukluk durumları

                  Fizyopatolojide NO


                  Miyokardda kontraktilitede bozulma ile seyreden temel patolojilerden birisi sepsistir ve bu olayda sitokinlerin aracılığı bilinmektedir. TNF-α, IL-6 ve IL-2’nin kalp kasında in vitro olarak hızlı ve reversibl bir negatif inotrop etki yaptığı gösterilmiş ve bu etkide öncelikle yapısal NOS (eNOS) aktivasyonunun aracı olduğu, ancak iNOS aktivasyonunun da azımsanmayacak düzeyde katkıda bulunduğu bildirilmiştir (Finkel ve ark., 1992). Diğer taraftan postiskemik miyokard depresyonunda da (“miyokardial dona kalma”) patogenezde sitokinler rol oynar. Reperfüzyon sırasında aktive olmuş lökositler ve makrofajlar iskemik miyokarda göç eder ve bu immun sistem hücrelerinden proinflamatuar sitokinlerin salıverilmesi miyokardda iNOS aktivasyonuna ve aşırı NO salıverilmesine neden olur. Klinikte bu olayın en tipik örneği koroner by-pass cerrahisinden sonra sıklıkla postoperatuar komplikasyon olarak ortaya çıkan “miyokardial dona kalma” tablosudur (Finkel ve ark., 1992).

                  Reperfüzyon hasarı

                  Fizyopatolojide ve terapötik yaklaşımda NO


                  NO’in çeşitli fonksiyonları arasında vasküler fonksiyonların düzenlenmesi açısından belki de en önemlisi endotel bağımlı relaksan faktör (EDRF) olarak rol oynamasıdır. Miyokard iskemisinde erken dönemde endotel disfonksiyonu oluşur; iskemik ataklar herhangi bir histolojik hasar oluşturmadan EDRF aracılı vazodilatasyonda kayba ve koroner arterlerde vazokonstriksiyona eğilime yol açar ve geçici koroner oklüzyonu takiben oluşan reperfüzyona bağlı miyokard hasarının oluşumunda dokuya nötrofil göçü rol oynamaktadır (Tsao ve Lefer, 1990). Sonuçta aktive lökositlerden serbest oksijen radikallerinin salıverilmesi tabloyu başlatır. Serbest oksijen radikalleri arasında ilk akla gelen superoksit anyonudur (O. 2 - ). Reperfüzyon sırasında hem O. 2 - , hem de NO üretimi söz konusudur ve bu iki molekül peroksinitriti (ONOO- ) oluşturur. Peroksinitrit, güçlü bir oksidandır ve biyolojik sistemlerde membranlarda lipid peroksidasyonu ve protein oksidasyonu reaksiyonlarına karışır (Radi ve ark., 1991). NOS inhibisyonu ile peroksinitriti oluşturan bir komponentin baskılanmasının reperfüzyon hasarını azaltacağı düşünülebilir. Ancak iskemi-reperfüzyonda NO’in protektif rolü olduğu da bilinmektedir. Öncelikle doku hasarında gelişen inflamatuar yanıtta nötrofillerin rolü tartışılmazdır. NO, lökosit migrasyonunu ve yapışkanlığını önleyerek ve mikrovasküler permeabilitede lökosit aracılı artışı baskılayarak inflamatuar hasarı belirli bir ölçüde sınırlar (Kubes ve ark., 1991). NO ayrıca lökosit adezyonunun güçlü bir uyarıcısı olan O. 2 - anyonunu inaktive eder ve nötrofillerde O. 2 - oluşumunu NADPH oksidaza direkt etki ile inhibe eder (Clancy ve ark., 1992). Nitekim eksojen uygulanan NO’in iskemi-reperfüzyon hasarında kardiyoprotektif olduğu, antiaritmik koruma sağladığı bildirilmiştir (Johnson ve ark., 1991). Ayrıca iskemi-reperfüzyonda NO üretiminin azalması koroner endotele nötrofillerin yapışmasını ve ek radikal oluşumunu tetikler; eksojen NO uygulaması bu mekanizmayı da tersine çevirebilir. Sonuçta NO’in toksisitesi veya protektif etkinliği arasındaki hassas denge göreceli olarak NO’in indirgenmiş formlarının (nitrojen monoksit ve nitrozonyum iyonu) oluşumuyla ayarlanır, çünkü bu moleküllerin toksisitesi de peroksinitrit oluşumuna bağlıdır.

                  Ateroskleroz

                  Fizyopatolojide NO


                  Hiperkolesterolemi ateroskleroz için önemli bir risk faktörüdür ve aterosklerozun patogenezinde hiperkolesterolemiye sekonder gelişen endotel disfonksiyonunun rolü tartışılmazdır. Aterosklerotik damarlarda henüz yapısal değişiklikler oluşmadan önce EDRF aracılı vazodilatasyon bozulmaktadır ve NO’in sentezi veya yıkımı arasındaki dengenin bozulması aracılık yapmaktadır. Aterosklerozda gözlenen ve NO’in EDRF fonksiyonunda azalma ile karakterize tablonun altında yatan temel nedenler Tablo 2’de gösterilmiştir.

                  eNOS ürünü olarak sentezlenen NO normal damarı aterosklerotik süreçten koruyan önemli bir antiaterojenik faktördür. NO substratı olan L-arjininle kronik tedavinin hayvan ateroskleroz modellerinde aterosklerotik lezyon oluşumunu inhibe ettiği (Aji ve ark., 1997); hiperkolesterolemik hastalarda L-arjinin infüzyonunun endotel bağımlı vazodilatasyonu akut olarak düzelttiği (Creager ve ark.,1992); diğer taraftan NOS inhibitörü LNAME’le tedavinin aterosklerotik lezyon oluşumunu tetiklediği bildirilmiştir (Kauser ve ark., 2000). Bunun da ötesinde ateroskleroz hayvan modellerinde eNOS’un genetik olarak defektinin de aortada aterosklerotik süreci hızlandırdığı ve aterosklerozun komplikasyonlarını artırdığı gözlenmiştir (Kuhlencordt ve ark., 2001).

                  Tablo 2. Aterosklerozda endotel disfonksiyonunun NO aracılı nedenleri.

                  NO yapımında azalma
                  • eNOS kofaktörü BH4 miktarında azalma*
                  • Substrat L-arjinin kullanımında yetersizlik
                  • eNOS aktivitesinde azalma
                  • eNOS ekspresyonunda azalma
                  • Endojen NOS inhibitörlerinde (ADMA) artış
                  NO yıkımında artış
                  • Superoksid yapımında artış
                  • Antioksidan savunmada azalma

                  * BH4, tetrahidrobiopteridin; ADMA, asimetrik dimetilarjinin.

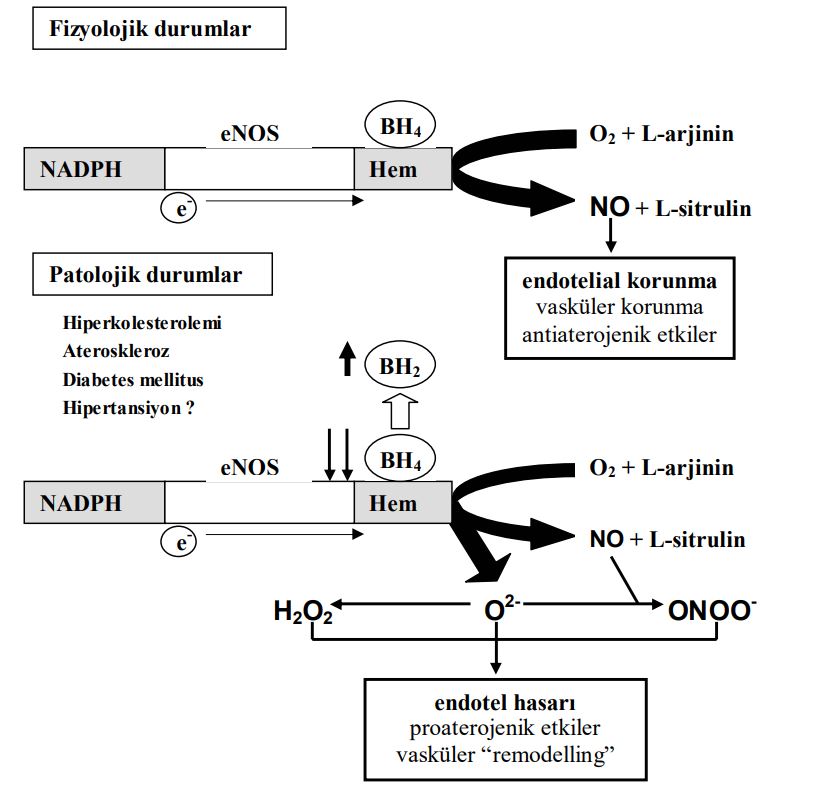
                  Disfonksiyonel eNOS-ateroskleroz ilişkisi değerlendirildiğinde akılda tutulması gereken temel nokta eNOS’un vasküler olaylarda iki farklı yüzü ile fonksiyon gördüğüdür. Şöyle ki; eNOS hem NO, hem de superoksid oluşturma kapasitesine sahip bir enzimdir, vasküler pteridin metabolizması değişikliklerine göre iki yönlü etki oluşturur. eNOS tarafından NO oluşturulabilmesi için optimal düzeylerde BH4 gerekmektedir. Pteridin metabolizmasının bozulduğu patolojik durumlarda eNOS, NO’ten çok O. 2 - oluşturan bir “hasar molekülü” olarak çalışır (Kawashima, 2004). Şiddetli hiperkolesterolemide olduğu gibi bazı patolojik durumlar oksidatif streste artışla birlikte seyreder ve eNOS protein düzeyleri ile doku pteridin metabolizmasındaki dengenin kısa süreli de olsa bozulması eNOS’ta “kenetsizlenme”ye (“uncoupling”) neden olur. Böylece disfonksiyonel eNOS, hiperkolesterolemik ortamda damar duvarında morfolojik anlamda yeniden yapılanmayı (“remodelling”); fonksiyonel anlamda ise iskemiye duyarlılıkta artışı tetikler (Şekil 1).


                  Şekil 1. Normal fizyolojik durumda eNOS proteini ile doku BH4 düzeyleri arasındaki hassas denge korunmaktadır ve eNOS aktivasyonu NO ve L-sitrulin oluşturur, NO vasküler bütünlüğü korur ve aterosklerozu ve damar duvarında yeniden yapılanmayı (“remodelling”) önler. Ateroskleroz veya hiperlipidemi gibi patolojik durumlarda oksidan stres artmıştır ve vasküler BH4 düzeyleri azalırken BH2 düzeyleri yükselmiştir. eNOS’un aktivasyonu “NOS kenetsizlenmesi” ve NO yerine superoksit oluşumuna neden olur. Superoksit ve birlikte oluşan hidrojen peroksit ile peroksinitrit endotelial fonksiyonu bozar ve aterosklerozu ve damar duvarında yeniden yapılanmayı tetikler (Kawashima, 2004).

                  Terapötik yaklaşımda NO

                  Patolojik ortamda pteridin metabolizmasını düzenleyerek eNOS fonksiyonunun düzeltil-mesi aterosklerozla seyreden vasküler bozukluklarda yeni bir tedavi stratejisi olarak sunulabilir. Dışarıdan BH4 verilmesinin apoli-poprotein E knockout farelerde aterosklerotik lezyonların oluşumunu inhibe ettiği gösteril-miştir (Ozaki ve ark., 2002). BH4 guanozin trifosfattan (GTP) GTP siklohidrolaz I (GTPCHI) enzimi aracılığıyla sentezlenir, dolayısıyla GTPCHI endotelial BH4 düzey-lerini artırmak ve endotelial disfonksiyonda eNOS aktivitesini normale çevirmek için iyi bir hedef yapıdır (Kawashima, 2004). Nitekim, bir hipertansiyon hayvan modeli olan “DOCA-salt” sıçanlara insan GTPCHI geninin karotis arter dokusuna ex vivo transferinin BH4 düzeylerini artırdığı ve EDRF aracılı gevşe-meyi düzelttiği bildirilmiştir (Zheng ve ark., 2003). Doku BH4 düzeylerinde küçük bir artışın normal eNOS aktivitesinin devamlılı-ğında yeterli olduğu düşünülmektedir. Diğer taraftan hiperkolesterolemi gibi bir patolojide NOS protein düzeylerinin tek başına basitçe yükseltilmesi, NO oluşumunu artırmaktan çok O. 2 - oluşumunu tetiklediğinden aksine zararlı etkilerle sonuçlanır. Bu nedenle NOS protein düzeylerini artırırken enzimatik aktivitenin devamlılığının da sağlanması uygun bir stra-teji olacaktır.

                  Diabetik anjiopati

                  Fizyopatolojide NO


                  Diabetik vasküler komplikasyonların gelişiminde ana basamak endotel disfonksiyonudur ve endotel disfonksiyonunun patogenezinde rol alan NO ilişkili faktörler genelde aterosklerozda olduğu gibidir (Tablo 2). Diabetik endotel disfonksiyonun gelişmesinde tetikleyici temel faktör dolaşımda yüksek konsantrasyonda glukozun bulunmasıdır. Hiperglisemi ile tetiklenen ilerlemiş glikozilasyon son ürünlerinin (AGE) oluşumu, poliol yolağının devreye girmesi, protein kinaz C’nin aktivasyonu gibi oksidatif strese neden olan faktörler de indirekt olarak NO yanıtında azalmaya yol açar (Şekil 2). Kültür ortamında yüksek konsantrasyonlarda glukoza maruz bırakılan koroner endotel hücrelerinde ozmolarite artışından bağımsız olarak eNOS veya iNOS aktivitesini değiştirmeden direkt oksidatif stres oluşturduğu ve antioksidan vitaminlerle inkübasyonda glukoz yüksekliğine bağlı bozuklukların düzeldiği bildirilmiştir (Ülker ve ark., 2004). Diğer taraftan yüksek glukoza maruz bırakılan kültüre endotel hücrelerinde eNOS gen ekspresyonu paradoks olarak artmış bulunmuştur, ancak aynı zamanda O. 2 - oluşumu da artmıştır (Cosentino ve ark., 1997). Deneysel hayvan diabet modellerinde ve diabetes mellitus hastalarında da hücresel düzeyde gözlenen bulgulara paralellik gösteren gözlemler bulunmaktadır. Nitekim sıçan streptozotosin diabet modelinde antioksidan vitaminlerle tedavinin bozulmuş endotel-aracılı gevşeme yanıtını düzelttiği gözlenmiştir (Çınar ve ark., 2001). Tip 2 diabetes mellituslu hastalarda antioksidan C vitamini uygulaması da ön kol kan akımı ölçümüyle saptanan NO aracılı endotelial vazodilatasyondaki bozulmayı tersine çevirerek akut düzelmelere neden olmuştur (Williams ve ark., 1996). Tüm bu gözlemler diabetteki anormal vasküler reaktiviteye, NO’in serbest oksijen radikalleri tarafından inaktivasyonunun aracı olduğu hipotezini doğrulamaktadır (Li ve Förstermann, 2000).

                  Hipertansiyon

                  Fizyopatolojide NO

                  Hayvanlarda normal organizmada eNOS’un inhibisyonu ortalama arter basıncında % 40’a varan artışa neden olmaktadır; bu bulgu, kan basıncının regülasyonunda dolaşımda sürekli bulunan endotelial kaynaklı NO’in aracı olduğunu göstermektedir (Rees ve ark., 1989). Dolayısıyla hipertansiyon hastalarında NO üretiminde veya etkinliğinde bozukluk beklenen bir patolojidir. Hipertansiyonda arteriyoler düz kasta hipertrofi oluşmakta ve damar duvarında düz kas hücresi:endotel hücresi oranı düz has hücresi lehine artmaktadır. Bu nedenle gerek hipertansiyon hayvan modellerinde, gerekse esansiyel hipertansif hastalarda asetilkolin, bradikinin, P maddesi, kalsiyum iyonofor gibi EDRF-NO salıveren uyaranlara yanıt azalmıştır; ancak endotelden bağımsız gevşeme yapan ajanlara (örneğin nitrovazodilatörler) yanıt bozulmaz (Taddei ve ark., 2000). Hatta esansiyel hipertansiyonun hayvan modeli olan spontan hipertansif sıçanlarda (SHR) aortta asetilkolinin yüksek konsantrasyonlarında kasıcı yanıt elde edilmektedir (Ülker ve ark., 2003a). Esansiyel hipertansif bireylerin normotansif çocuklarında da asetilkolin yanıtları küntleşmiş bulunmuştur; bu bulgu, esansiyel hipertansiyonlulardaki endotel yanıtı bozukluğunun genetik kökenli olduğunu ve kan basıncı değerlerinden bağımsız oluştuğunu göstermektedir (Taddei ve ark., 1996). Hipertansif bireylerde eNOS geninde birkaç mutasyon bildirilmiştir. Geniş bir popülasyonda çalışılmış olan ve en yaygın saptanan gen mutasyonu ise Glu298Asp polimorfizmidir, bu mutasyonun özellikle enzimin nonkatalitik bir bölümünü etkilediği ve protein-protein etkileşimine karıştığı bildirilmektedir (Hingorani, 2001). Hipertansiyonda NO üretiminde bozukluk genellikle substrat yetersizliğinden çok sentez bozukluğu veya yıkım fazlalığı yönündedir. eNOS aracılı NO sentezi değerlendirildiğinde, SHR aortasında eNOS ekspresyonunun yaşa bağlı değişiklikler gösterdiği; yaşlanmayla eNOS aktivitesinde ve ekspresyonunda azalma olduğu bildirilmiştir (Chou ve ark., 1998). 4-8 haftalık genç SHR’larda vasküler dokuda eNOS ekspresyonu yüksek bulunmuştur. Yaşla iNOS indüksiyon kapasitesi de artmaktadır. SHR’larda mezenter arterde iNOS’un indüklenme kapasitesi normotansif kontrol sıçanlara (Wistar Kyoto-WKY) oranla daha yüksek bulunmuştur (Briones ve ark., 2000). Sonuçta hipertansif damarda aslında hipertansif sürecin erken evrelerinde paradoks bir şekilde NO üretiminde artışa yönelik değişiklikler olmaktadır, ancak eNOS aktivitesi yüksek olmasına rağmen EDRF-NO’ya verilen vazodilatör yanıtta bozulma gözlenmesi NO yıkımındaki artış ve özellikle de NO’in O. 2 -tarafından oksidasyonunda artış ile açıklanmaktadır (Ülker ve ark., 2003a).

                  O. 2 - endotel hücrelerinde esas olarak ksantin oksidaz, siklooksijenaz ve NADPH oksidaz gibi radikal üreten enzimler veya disfonksiyonel NOS’un kendisi tarafından üretilmektedir. SHR aorta dokusunda eNOS yanında NADPH oksidaz aktivitesi ve ekspresyonunda da artış bulunmuştur (Ülker ve ark., 2003a). Gerçekten de 12-16 haftalık erişkin SHR’larda O. 2 - üretimi belirgin bir şekilde yüksek bulunmuştur (Lerr ve ark., 1999). SHR aortasının NADPH oksidaz inhibitörleri ve antioksidan vitaminlerde inkübasyonu NADPH oksidaz aktivitesini ve O. 2 - oluşumunu inhibe etmiş, eNOS aktivitesini ve NO oluşumunu bartırmış ve bozulmuş endotelial gevşemeyi düzeltmiştir (Ülker ve ark., 2003b).

                  Hayvan hipertansiyon modellerinde gözlenen endotel disfonksiyonu insanda normal bireylerde ilerleyen yaşla da dikkati çekmektedir. Normotensif kişilerde yaklaşık 30 yaş civarında endotel disfonksiyonu gözlenmekte ve fizyopatolojide L-arjinin/NO yolunda primer defekt rol oynamaktadır; daha ileri yaşlarda, örneğin 60 yaşından sonra bu defekt hala devam etmekte, ancak varolan endotel disfonksiyonuna siklooksijenaz ürünleri olan endotel-bağımlı kontraktil faktörler katkıda bulunmaya başlamaktadır (Taddei ve ark., 1997). Hipertansif bireylerde bu patolojik süreç daha erken başlar; henüz 18 yaşında L-arjinin uygulaması ile geri çevrilebilen bir endotel disfonksiyonu saptanmaktadır, orta yaşlarda (30-45 yaş) L-arjinin/NO yolağındaki defekte kontraktil siklooksijenaz ürünlerinin üretimindeki artış eşlik etmeye başlar ve nihayet 45 yaşından sonra artık endotel disfonksiyonu L-arjinin uygulaması ile düzeltilememektedir (Taddei ve ark., 1997). hücrelerinde eNOS aktivitesini uyardığı (Salameh ve ark., 1996) ve eNOS ekspresyonunu artırdığı (Ding ve Vaziri, 1998) bildirilmiştir. Ayrıca kalsiyum kanal blokerlerinin antioksidan aktiviteleri üretilen NO’in stabilitesinin korunması açısından da önem kazanmaktadır (Mak ve ark., 1992).

                  Kalp yetmezliği
                  Fizyopatolojide NO


                  Kardiyomiyopati patogenezine NO’in katılımına ilişkin veriler yetersiz kalmaktadır, ancak hayvan modellerinde miyositlerde bulunan NO’in kardiyak kontraktilitede aracı olduğu düşünülmektedir (Brady ve ark., 1993). Daha sonra kronik idiopatik dilate kardiyomiyopatili hastalarda ventriküler biyopsi materyalinde iNOS aktivitesinin saptanması konuya ilgi çekmiştir (De Belder ve ark., 1993), ancak iNOS’un ventrikül dokusundaki hangi hücrelerden kaynaklandığı konusu açık değildir. Konjestif kalp yetmezlikli hastalarda ve hayvan modellerinde endotel aracılı vazodilatasyon bozulmuştur ve yetmezlikte gözlenen anormal vazokontriksiyona eşlik ettiği düşünülmektedir (Warren ve ark., 1994).

                  Preeklampsi
                  Fizyopatolojide NO


                  Normal gebelikte NO üretimi artmıştır ve vasküler aynıtın düzenlenmesinde NO’nun katkısı belirgindir. Preeklampside kan basıncındaki yükselme endotel disfonsiyonu ve NO üretiminde azalma ile ilişkili olabilir (Warren ve ark., 1994). NO’in preeklampside gelişen ödeme ne ölçüde katkıda bulunduğu ise bilinmemektedir.

                  Kaynaklar

                  Aji W, Ravalli S, Szabolcs M ve ark. L-arginine prevents xantoma development and inhibits atherosclerosis in LDL receptor knockout mice. Circulation. 1997;95:430-7. Bayraktutan U. Free radicals, diabetes and endothelial dysfunction. Diabet Obes Metab. 2002;4:224-38. Brady AJB, Warren JB, Poole-Wilson PA, Williams RE, Harding SE. Nitric oxide attenuates cardiac myocyte contraction. Am J Physiol. 1993;265:H176-82. Briones AM, Alonso MJ, Marin J, Balfagon G, Salaices M. Influence of hypertension on nitric oxide synthase expression and vascular effects of lipopolysaccharide in rat mesenteric arteries. Br J Pharmacol. 2000 Sep;131(2):185-94. Chou TC, Yen MH, Li CY, Ding YA. Alterations of nitric oxide synthase expression with aging and hypertension in rats. Hypertension. 1998;31:643- 8. Clansy RM, Leszczbska-Piziak J, Abramson SB. Nitric oxide, an endothelial cell relaxation factor, inhibits neutrophil superoxide anion production via direct action on the NADPH oxidase. J Clin Invest. 1992;90:1116-21. Cobb JP Nitric oxide synthase inhibition as therapy for sepsis: a decade of promise. Surg Infect (Larchmt). 2001;2(2):93-100. Creager MA, Gallagher SJ, Girerd XJ ve ark. Larginine improves endothelium-dependent vasodilation in hypercholesterolemic humans. J Clin Invest. 1992;90:1248-53. Çınar MG, Ülker S, Alper G, Evinç A. Effect of dietary vitamin E supplementation on vascular reactivity of thoracic aorta in streptozotocindiabetic rats. Pharmacol. 2001;62:56-64. Daemen-Gubbels CRGH, Groeneveld PHP, Groeneveld ABJ, van Kamp GJ, Bronsveld W, Thijs LG. Methylene blue increases myocardial function in septic shock. Crit Care Med. 1995;23:1363-70. De Belder AJ, Radomski MW, Why HJF ve ark. Nitric oxide synthase activities in human myocardium. Lancet. 1993;341:84-5. Ding Y, Vaziri ND. Calcium channel blockade enhances nitric oxide synthase expression by cultured endothelial cells. Hypertension. 1998;32:718-23. Finkel MS, Oddis CV, Jacob TD ve ark. Negative inotropic effects of cytokines on the heart mediated by nitric oxide. Science. 1992;257:387- 9. Geroulanos S, Schilling J, Çakmakçı M ve ark. Inhibition of NO synthesis in septic shock. Lancet. 1992;339:435 (letter). Gonzales C, Fernandez A, Mortin C, ve ark. Nitric oxide fro endothelium and smooth muscle modulates responses to sympathetic nerve stimulation: implications for endotoxin shock. Biochem Biophys Res Commun. 1992;186:150-6. Hingorani AD. Polymorphisms in endothelial nitric oxide synthase and atherogenesisi: John French Lecture 2000. Atherosclerosis. 2001;154:521-7. Johnson G, Tsao PS, Lefer AM. Cardioprotective effects of authentic nitric oxide in myocardial ischemia with reperfusion. Crit Care Med. 1991;19:244-52. Kauser K, da Cunha V, Fitch R, Mallari C, Rubany, GM. Role of endogenous nitric oxide in progression of atherosclerosis in apolipoprotien E-deficient mice. Am J Physiol 2000;278:H1679- 85. Kawashima S. The two faces of endothelial nitric oxide synthase in the pathophysşology of atheroseclerosis. Endothelium. 2004;11:99-107. Kirkebøen KA, Strand ØA. The role of nitric oxide in sepsis-an overview. Acta Anaesthesiol Scand. 1999;43:275-88. Kubes P, Suzuki M, Granger DN. Nitric oxide: an endogenous modulator of leucocyte adhesion. Proc Natl Acad Sci USA. 1991;88:4651-5. Kuhlencordt PJ, Gyurko R, Han F ve ark. Accelerated atherosclerosis, aortic aneurysm formation and ischemic heart disease in apolipoprotien E/endothelial nitric oxide synthase doubleknockout mice. Circulation. 2001;104:448- 54. Lerr S, Brosnan MJ, McIntyre M, Reid JL, Dominiczak AF, Hamilton CA. Superoxide anion production is increased in a model of genetic hypertension. Role of endothelium. Hypertension. 1999;33:1353-8. Li H, Förstermann U. Nitric oxide in the pathogenesis of vascular disease. J Pathol. 2000;190:244-54. Mak IT, Boehme P, Weglicki WB. Antioxidant effects of calcium channel blockers against free radical injury in endothelial cells. Correlation of protection with preservation of glutathione levels. Circ Res. 1992;70:1099-103. Nathan C, Xie QW. Nitric oxide syntheses:roles, tolls, controls. Cell. 1994;78:915-8. Nava E, Palmer RMJ, Moncada S. The role of nitric oxide in endotoxic shock: Effects of NGmonomethyl-L-arginine. J Cardiovasc Pharmacol. 1992;20:5132-4. Ozaki M, Kawashima S, Yamashita T ve ark. Overexpression of endothelial nitric oxide synthase accelerates atherosclerotic lesion formation in apoE-deficient mice. J Clin Invest. 2002;110:331-40. Radi R, Beckman JS, Bush KM ve ark. Peroxynitrite oxidation of sulphydryls. The cytotoxic potential of superoxide and nitric oxide. J Biol Chem. 1991;266:4244-50. Radomski MW, Palmer RMJ, Moncada S. Glucocorticoids inhibit expression of an inducible, but not the constitutive, nitric oxide synthase in vascular endothelial cells. Proc Natl Acad Sci USA. 1990;87:10043. Rees DD, Palmer RMJ, Moncada S. Role of endothelium-derived nitric oxide in the regulation of blood pressure. Proc Natl Acad Sci USA. 1989;86:3375-8. Salameh A, Schomecker G, Breitkopf K, Dhein S, Klaus W. The effect of the calcium-antagonist nitrendipine on intracellular calcium concentration in endothelial cells. Br J Pharmacol. 1996;118:1899-904. Schiffrin EL, Deng LY. Structure and function of resistance arteries of hypertensive patients treated with a beta-blocker or a calcium channel antagonist. J Hypertens. 1996;14:1247-55. Schneider F, Lutun PH, Hasselman M, Stoclet JC, Temple JD. Methylene blue increases systemic vascular resistance in human septic shock. Intensive Care Med. 1992;18:309-11. Szabo C.Alterations in nitric oxide production in various forms of circulatory shock. New Horiz. 1995 Feb;3(1):2-32. Taddei S, Virdis A, Mattei P ve ark. Defective Larginine nitric oxide in offspring of essential hypertensive patients. Circulation. 1996;27:849- 53. Taddei S, Virdis A, Mattei P ve ark. Hypertension causes premature aging of endothelial function in humans. Hypertension. 1997;29:736-43. Taddei S, Virdis A, Ghiadoni L, Savletti G, Savletti A. Endothelial dysfunction in hypertension. J Nephrol. 2000;13:205-10. Ülker S, Çınar MG, Can C, Evinç A, Koşay S. Endotoxin-induced vascular hyporesponsiveness in rat aorta: in vitro effect of aminoguanidine. Pharmacol Res. 2001;44:21-6. Ülker S, McMaster D, McKeown PP, Bayraktutan U. Impaired activities of antioxidant enzymes elicit endothelial dysfunction in spontaneous hypertensive rats despite enhanced vascular nitric oxide generation. Cardiovasc Res. 2003a;59:488-500. Ülker S, McKeown PP, Bayraktutan U. Vitamins reverse endothelial dysfunction through regulation of eNOS and NAD(P)H oxidase activities. Hypertension. 2003b;41:534-9. Ülker S, McMaster D, McKeown PP, Bayraktutan U. Antioxidant vitamins C and E ameliorate hyperglycaemia-induced oxidative stress in coronary endothelial cells. Diabet Obes Metabol. 2004;6:442-51. Warren JB, Pons F, Brady AJB. Nitric oxide biology: implications for cardiovascular therapeutics. Cardiovasc Res. 1994;28:25-30 Williams SB, Cusco JA, Roddy MA, Johnstone MT, Creager MA. Impaired nitric oxide-mediated vasodilation in patients with non-insulindependent diabetes mellitus. J Am Coll Cardiol. 1996;27:567-74. Wolfe TA, Dasta JF. Use of nitric oxide synthase inhibitors as a novel treatment for septic shock. Ann Pharmacother. 1995;29(1):36-46. Zheng JS, Yang XQ, Lookingland KJ ve ark. Gene transfer of human guanosine 5′-triphosphate cyclohydrolase I restores vascular tetrahydrobiopterin levels and endothelial function in low renin hypertension. Circulation. 2003;108:1238-45.
                  Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                  Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                  Yorum yap


                  • #39
                    Nitrik oksit ve santral sinir sistemi
                    Prof. Dr. Feyza ARICIOĞLU
                    Marmara Üniversitesi, Eczacılık Fakültesi, Farmakoloji Ab.D., İstanbul


                    Nitrik oksit (NO) yarılanma ömrü saniyelerle ifade edilen bir serbest radikal gazdır. Son derece labildir. Oksijen ve su aracılığıyla nitratlara ve nitritlere parçalanır. Uzun süredir bilinmekle beraber 1988 yılına kadar omuralılarda biyolojik fonksiyonları ile ilişkili bir kanıt bulunmamaktaydı. 1988 yılından itibaen gerçekleştirilen çalışmalar santral NO ve nitrik oksit sentazın (NOS) varlığını gösteriştir. NO’nun santral sinir sisteminde (SSS) nöronlar arası iletimden sorumlu bir molekül olabileceğine işaret eden bir çok veri elde edildi ve NO’nun yeni bir tip nörotransmitter olabileceği ileri sürüldü. Gerçekten de NO bir nörondan başka bir nörona difüze olur ve moleküler hedefleri guanilat siklaz ve ikincil ulak cGMP aracılığı ile etkiler. SSS’de Larginin-NO yolağı bulunduğu düşünülmektedir. Sinir uçlarında veziküllerde depolanmaz ve salıverildikten sonra sinir uçlarına geri alındığına dair bir kanıt yoktur. Klasik nörotransmitterlerin aksine eksositoz ile salıverilmez, salıverildikten sonra hedef organ ve dokularda kendine özgü reseptörlere bağlanmaz. Bu nedenlerle de NO’nun alışılmışların dışında yeni bir nörotransmitter olabileceği düşünülmüştür. Beyinde NOS aktivitesi bölgelere göre eşit olmayan bir dağılım gösterir. En yüksekten düşüğe doğru sırasıyla serebellum, hippokampus, striatum, korteks, hipotalamus, orta beyin ve medullada bulunur. Kısa yarılanma ömrü nedeniyle NO’nun rolünü araştırmaya yönelik tüm çalışmalar ya prekürsörü (Larjinin)/donörü (nitroprussid) ya da NOS inhibitörleri ile yapılmaktadır.

                    NOS inhibitörleri
                    NOS inhibitörü Kısaltma Inhibitör
                    NG-monometil-L-arginin L-NMMA nNOS = eNOS > iNOS
                    NG-nitro-L-arginin L-NA nNOS = eNOS >> iNOS
                    NG-amino-L-arginin L-NAA nNOS = iNOS > eNOS
                    L-NG-nitroarginin L-NNA
                    7-nitroindazol 7-NI nNOS = eNOS = iNOS
                    L-NG-nitro arginin metil ester L-NAME
                    Nδiminoetil-L-ornitin L-NIO iNOS > eNOS = nNOS
                    Aminoguanidin AMG iNOS > eNOS = nNOS
                    Agmatin AGM eNOS > İNOS > nNOS
                    NOS inhibitörleri içinde sadece agmatin endojen NOS inhibitörü olarak kabul edilmektedir. AGM, NOS’un üç izoformunu kompetitif olarak inhibe eder. AGM, L-arjininden arjinin dekarboksilaz aracılığı ile sentezlenir, agmatinaz enzimi ile de putresin ve üreye parçalanır. NO ile aynı prekürsörden sentezlenen agmatin SSS’de yaygın dağılım gösterir. En yüksek konsantrasyonda bulunduğu yerler hipokampus, ön beyin ve serebral kortekstir. Ayrıca hem arjinin dekarboksilaz hem de agmatinaz beyinde yaygın dağılım gösterir. Agmatin ve NOS enziminin hücresel kolokalizasyonu, bu aminin NO üretiminin endojen bir modülatörü olduğunu ve biyolojik etkilerini NO sistemi ile etkileşerek meydana getirdiğini düşündürmektedir. Dahası nöronlarda depolanması, kalsiyuma bağımlı depolarizasyonla salınması, re-uptake ve agmatinazla inaktive edilmesi nedeniyle AGM’in kendisinin de yeni bir nörotransmitter olabileceği tartışılmaktadır.

                    NOS’un santral etkileri
                    NO’nun SSS’inde genel olarak zararlı olduğu kabul edilir. Alzheimer hastalığı, Huntington hastalığı ve serebral iskemide gözlenen nörotoksisiteden sorumlu tutulmaktadır. Ayrıca, kronik alkol ve serebral inme sonrası gözlenen santral hasarlara NO’nun katkısı vardır. Epileptik aktivite, nosisepsiyon, öğrenme ve bellek, anksiyete, depresyon, stres, yeme ve içme davranışı, seksüel davranış, nöroendokrin fonksiyonlar, nörotransmitter salınımının modülasyonu, kan-beyin bariyerinin devamlılığı, kardiyak ritm, uyku-uyanıklık siklusunun düzenlenmesinde rol alır.

                    NOS inhibitörlerinin bazı santral etkilerine baktığımızda antikonvulsan, anksiyolitik, antidepresan, akut ağrı modellerinde analjezik etkileri olduğunu, mononöropatik ağrıyı baskılayabilidiklerini, öğrenme ve belleği modüle ettiklerini, yeme ve içme davranışını inhibe ettiklerini görüyoruz. Uyanıklık süresini uzatıp yavaş dalga uykusunu azaltırlar. Alkol yoksunluk sendromunu, nalokson ile presipite edilmiş opioid yoksunluk sendromu ve mekamilamin ile presipite edilmiş nikotin yoksunluk sendromu belirtilerini hafifletirler. Amfetamin, kokain ve kafein gibi psikostimulanlarla indüklenen lokomotor hiperaktiviteyi bloke ederler. Genetik olarak alkol tercih eden sıçanlardaki alkol alımını azaltır, alkol ile pekiştirilmiş yanıtları (etanol reinforced responding) bloke eder. Sözkonusu etkileri NO prekürsörü Larginin önlerken, NO donörleri potansiyalize eder.

                    NO ve morfin

                    Deney hayvanlarında morfin ile NO arasındaki ilişkiye dair pek çok bulgu vardır. Bu çalışmaların sonuçlarına göre;
                    • NOS’un inhibisyonu (L-NAME, L-NNA, LNMMA, L-NIO, 7-NI, AGM) sıçanlarda morfine tolerans gelişimini önler.
                    • NOS’un inhibisyonu morfinin antinosiseptif etkisine tolerans gelişimini engeller.
                    • AGM morfinin antinosiseptif etkisini potansiyalize eder.
                    • NOS inhibitörleri morfin bağımlı hale getirilmiş izole kobay ileumunda naloksonla oluşan kontraktil yanıtı (yoksunluk kasılması) inhibe ederler.
                    • NOS inhibitörleri sıçanlarda nalokson ile presipite edilmiş morfin yoksunluk sendromunun belirtilerini (morfin peleti implantasyonu ile oluşturulan fiziksel bağımlılığın şiddetini) hafifletirler ve morfin toleransını modüle ederler.
                    • İsosorbid dinitrat (ISDN) gibi NO donörleri ise morfin yoksunluk sendromu belirtilerini kötüleştirir.
                    • Endojen NOS inhibitörü AGM hem in vitro hem de akut olarak uygulandığında invivo morfin yoksunluğunu baskılar.
                    • AGM morfin peleti implantasyonu ile eş zamanlı olarak başlayıp kronik olarak uygulandığında morfine fiziksel bağımlılık gelişmesini engeller.
                    • Genetik olarak nNOS üretmeyen farelerde AGM morfin yoksunluk sendromunun santral belirtilerine etki edemezken periferik belirtilerini tümüyle baskılar.
                    • Morfin bağımlılığı ve yoksunluk sendromu sırasında endojen agmatin miktarı ve sentez enzimi olan arjinin dekarboksilazın aktivesi hem periferde hem de beyinde artar.
                    • AGM sıçanlarda morfine bağlı adenilat siklaz süperaktivasyonunu bloke eder.
                    • Morfin bağımlı farelerde nNOS immünoreaktivitesi olfactory bulb, olfactory nuclei, cerebellum, locus coeruleus, medulla oblangata da artar, hipotalamusta ise azalır.
                    • Kronik morfin uygulanan sıçanlarda lokus ceruleus ve striatumda görülen tirozin hidroksilaz indüksiyonu AGM ile inhibe eder.

                    Santral nitrerjik sistem ve bağımlılık arasında oldukça sıkı bir ilişki olduğu, NOS inhibitörlerinin psikiyatride ve bağımlılık tedavisinde yeni yaklaşımların oluşturulmasında önemli olduğu düşünülmektedir.

                    Kaynaklar 1. Arıcıoğlu-Kartal, F., Uzbay I.T.: Inhibitory effect of agmatine on naloxone precipitated abstinence syndrome in morphine dependent rats. Life Sci. 61: 1775-1781, 1997. 2. Arıcıoğlu-Kartal, F, Regunathan, S.: Effect of chronic morphine treatment of the biosynthesis of agmatine in rat brain and other tissues. Life Sci. 71: 1695-1701, 2002. 3. Arıcıoğlu F., Regunathan S, Piletz JE.: Is agmatine an endogenous factor against stress? Proc.NY. Acad.Sci. 1009: 127-133, 2003. 4. Arıcıoğlu F, Altunbas H.: Is agmatine an endogenous antidepressant/anxiolytic compound? Proc.NY. Acad.Sci. 1009: 139-141, 2003. 5. Arıcıoğlu F, Kan B, Yillar O, Korcegez E, Berkman K.: Effect of agmatine on electrically and chemically induced seizures in mice. Proc.NY. Acad.Sci. 1009: 141-147, 2003. 6. Arıcıoğlu F, Ercil E, Dulger G.: Agmatine inhibits naloxone-induced contractions in morphine dependent guinea-pig ileum. Proc.NY. Acad.Sci. 1009: 147-152,2003. 7. Arıcıoğlu F, Korcegez E, Bozkurt A, Ozyalcin S.: Effect of agmatine on acute and mononeuropathic pain. Proc.NY. Acad.Sci. 1009: 106-116, 2003. 8. Arıcıoğlu F, Paul I.A., Regunathan S.: Agmatine reduces only peripheral-related behavioural signs, not the cenral signs, of morphine withdrawal in nNOS deficient transgenic mice. Neurosci. Lett. 354: 153-157, 2004. 9. Arıcıoğlu F, Means A., Regunathan S.: Effect of agmatine on the development of morphine dependence in rats: potential role of cAMP system. Eur. J. Pharmacol. 504: 191-197. 2004. 10. Goren Z., Arıcıoğlu-Kartal, F. Yurdun T., Uzbay T: Investigation of extracellular L-citrulline concentration in the striatum during alcohol withdrawal in rats. Neurochem. Research. 26: 1327, 2001. 11. Uzbay T, Oglesby MW.: Nitric oxide and sunbstance dependence. Neurochem. Biobehav. Rev. 25: 43-52, 2001.
                    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                    Yorum yap


                    • #40
                      Nitrik oksit ve solunum sistemi
                      Doç. Dr. Bülent GÜMÜŞEL
                      Hacettepe Üniversitesi, Eczacılık Fakültesi, Farmakoloji Ab.D., Ankara


                      1980’de Robert Furchgott’un damar endotelyal muskarinik reseptörlerinin asetilkolin ile aktive edildiğinde damar endotel hücrelerinden endotel-kaynaklı gevşetici bir faktör (EDRF) salıverdiğini göstermesi (1) ardından 1987 yılında Salvador Moncada ve Louis Ignarro’nun EDRF’nin nitrik oksit (nitrojen monoksit, NO) olabileceğine dair kanıtları ortaya koyması (2,3) sigara dumanında, ekzoz gazlarında bulunduğu bilinen, atmosferi kirlettiği, ozon tabakasını deldiği ve asit yağmurlarına neden olduğu bildirilen ufak, hafif ve basit molekül NO’nun kaderini bir anda değiştirmiştir.

                      NO, hemoglobinle hızla etkileşiminden dolayı in vivo olarak kısa yarılanma ömrüne (1-5 s) sahip, eşleşmemiş bir elektronu olan bir serbest radikaldir. NO, oksijen, süperoksid radikalleri veya geçiş metalleri (hemoproteinlere bağlı demir gibi) ile hızla reaksiyona girer. NO, kan akımının regülasyonu, trombosit fonksiyonları, non-adrenerjik non-kolinerjik (NANK) nörotransmisyon ve santral sinir sistemi hafızası gibi pek çok fizyolojik olayda düşük konsantrasyonlarda bir sinyal olarak fonksiyon görürken tümörler ve patojenlere karşı ise sitotoksik ve sitostatik savunma mekanizmalarında yüksek konsantrasyonlarda çeşitli biyolojik fonksiyonları etkileyen ulak moleküldür (4). Pek çok çalışma NO’nun pulmoner fonksiyonları modüle etmesinde ve çeşitli pulmoner hastalıkların patogenezinde önemli bir role sahip olduğunu göstermektedir (5,6,7). Bununla birlikte NO, hayvanların ve insanın solunum havasında saptanmış (8) ve NO konsantrasyonunun astım gibi solunum yollarının farklı inflamatuvar hastalıklarında değiştiği bildirilmiştir (9,10,11).

                      Solunum sisteminde NO’nun hücresel kaynağı ve biyosentezi

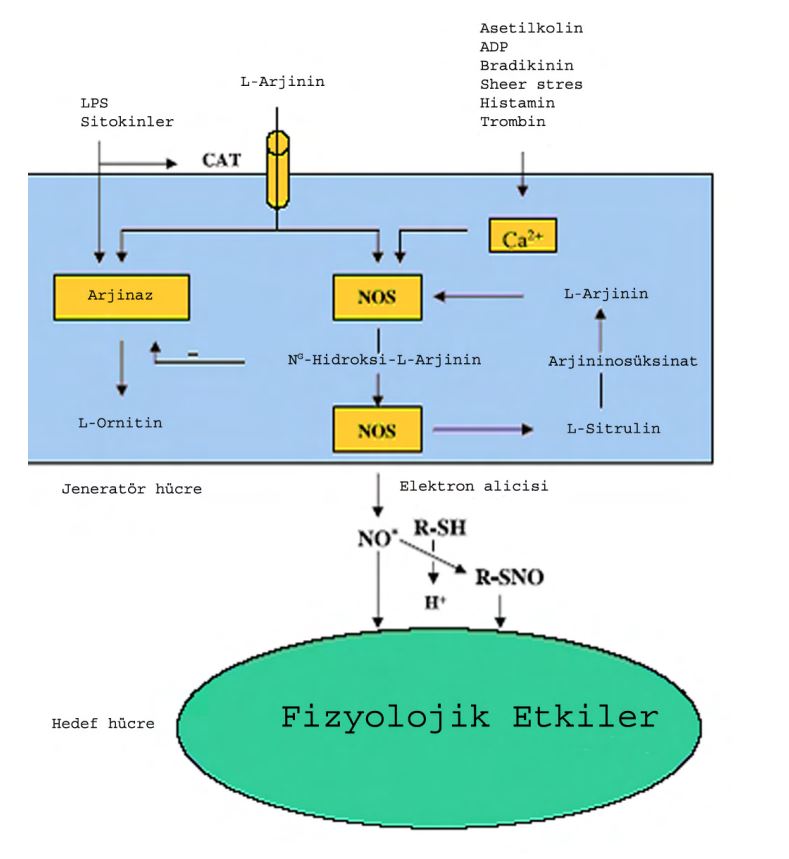
                      Solunum sisteminde NO, epitel hücresi, solunum yolu sinirleri, inflamatuvar hücreler (makrofajlar, nötrofiller, mast hücreleri), damar endotel, düz kas hücreleri, Tip II alveolar hücreler gibi çeşitli hücre tiplerinde sentezlenmektedir (12). NO, L-arjinin amino asiti üzerindeki terminal guanidinium nitrojen’in beş elektron oksidasyonu ile oluşmaktadır (Şekil 1). Bu reaksiyon hem oksijen hem de nikotinamid adenin dinükletid fosfat (NADPH) bağımlıdır ve nitroksil (NO- ) yanı sıra L-sitrulin oluşmasıyla sonuçlanmaktadır (13). Fonksiyonel olarak 1990 yılında Bult ve diğ. (14) tarafından tanımlanan NO sentezinden sorumlu enzim sistemi nitrik oksit sentaz’ın (NOS) 3 farklı izoformu vardır: 1) yapısal nöronal NOS (NOS I veya nNOS); 2) indüklebilir NOS (NOS II veya iNOS); 3) yapısal endotelyal NOS (NOS III veya eNOS). Bu üç NOS izoformuda solunum yollarında eksprese edilmektedir (15,16,17,18,19).

                      Fonksiyonel olarak, NOS yapısal (cNOS) ve indüklenebilir (iNOS) formları şeklindedir (20). cNOS, Ca+2 ve kalmodulin bağımlı bir enzim olup saniyeler içerisinde selektif agonist ile reseptör stimulasyonuna bağlı olarak NO’yu fentomolar veya pikomolar konstrasyonlarda salıverirler (Şekil 1). iNOS izoformu ise pretranslasyonel düzeyde regüle edilir ve tümör nekroz faktör-α (TNF- α) ve interferon-γ ve interlökin-1β gibi proinflamatuvar sitokinler ile indüklenir (21). iNOS, indüklenmesinden birkaç saat sonra nM konsantrasyonlarda proinflamatuvar NO salıverir ve bu uzun süreli (saatler, günler) devam edebilir.

                      Bu üç NOS izoformunun subselüler lokalizasyonu da değişkenlik gösterir. nNOS ve iNOS çözünür sitozolik proteinlerdir. eNOS ise hücresel membranda partiküler subselüler fraksiyonda özellikle de plazmalemmal kaveola’da bulunur. Endotel hücrelerinde eNOS ve kaveolin eNOS aktivitesini baskılar. Agonistin aktivasyonundan sonra hücre içi Ca+2 konsantrasyonundaki artış kalmodulin’in eNOS’a bağlanmasına neden olur ve eNOS’un kaveolinden ayrışmasını sağlar. eNOS-kalmodulin kompleksi hücre içi Ca+2 konsantrasyonu azalana kadar NO sentezler. Daha sonra yeniden inhibitör eNOS-kaveolin kompleksi oluşur (22).


                      Şekil 1. L-arjinin uptake ve metabolizması. L-arjinin katyonik amino asit transport (CAT) sistemi ile hücre içerisine alınır. L-arjinin’den NOS enzimi ile NO sentezlenir. cNOS hücre içi Ca+2 konsantrasyonunun artmasıyla aktive olur. Lipopolisakkarid (LPS) ve çeşitli sitokinler hem L-arjinin transportunu hem de arjinaz aktivitesi artırır. NO tiyol gruplarına bağlanarak S-nitrozotiyolleri oluşturur (Physiol. Rev. 84:731-765, 2004’den alınmıştır).

                      Solunum yollarında NOS lokalizazyonu incelendiğinde; eNOS’un (NOS III) pulmoner damar endotel hücrelerinde, bronşiyal epitel, Tip II alveolar epitel hücrelerinde; nNOS’un (NOS I) trakeadan bronşlara doğru azalan yoğunlukta solunum yolları sinirlerinde; iNOS’un (NOS II) ise Tip II alveolar epitel hücreleri, fibroblastlar, solunum yolları ve damar düz kas hücreleri, solunum yolları epitel hücreleri, mast hücreleri, nötrofiller ve kondrositlerde yoğun olarak bulunduğu gösterilmiştir (23). Aynı zamanda son dönemde insan akciğer epitel hücrelerinde iNOS’un “yapısal” ekspresyonu mRNA ve protein düzeyinde gösterilmiştir (24,25).

                      NO’nun etki mekanizması

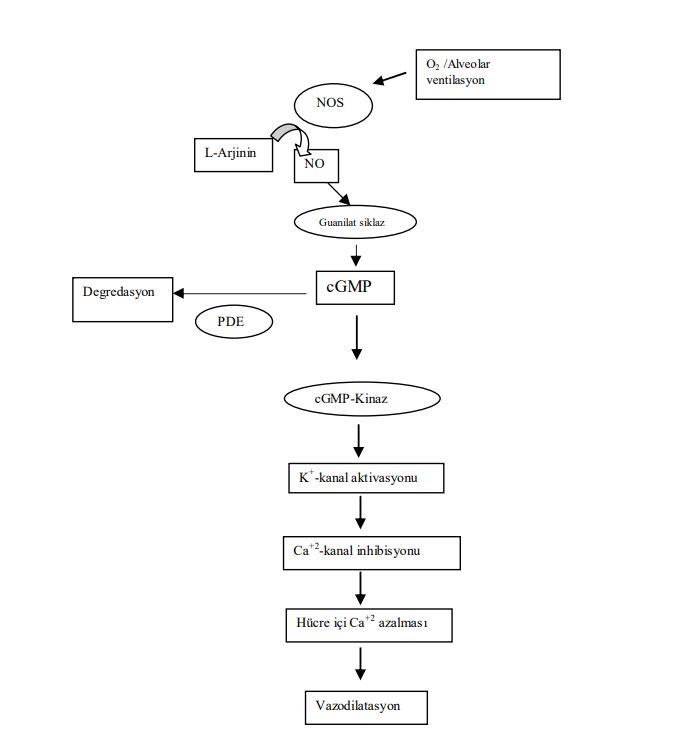
                      NO, biyolojik aktivitesini temel olarak 2 mekanizma ile gösterir: 1) NO aracılı siklik guanozin monofosfat (cGMP) bağımlı; 2) cGMP bağımsız mekanizmalar. Yapılan çalışmalar NO’nun pek çok biyolojik aktivitesinde (Ör: solunum yolu düz kas gevşemesi) her iki mekanizmayı da kullandığını göstermektedir (26,27,28,29,30). NO’nun biyolojik aktivitesinde en iyi tanımlanmış hedef bölgesinin çözünür guanilat siklazın hem komponenti içerisindeki Fe+2’ye bağlanması ve buna bağlı olarak GTP’nin cGMP’ye dönüşümü sağlanır. Bunun ardından cGMP, tip I çözünür cGMP-bağımlı protein kinaz’a (PKG) bağlanarak hücre içi etkilerini oluşturur (31). Genel olarak cGMP’nin düz kas gevşemesini iki moleküler mekanizmayı aktive ederek başlattığı kabul edilmektedir: 1) Hücre içi Ca+2 konstrasyonunu azaltarak; 2) Kontraktil sistemin Ca+2’a duyarlılığını azaltarak. İlk mekanizmada aktive olmuş PKG, çeşitli hedef proteinleri fosforilleyerek hücre içi Ca+2 konsantrasyonunun azalmasına neden olur. PKG, Ca+2 ile aktive edilen K+ kanallarını stimule ederek, membran Ca+2 kanal aktivitesini inhibe ederek, plazma membranındaki ve sarkoplazmik redikulumdaki Ca+2-ATPaz pompasını aktive ederek ve inositol 1,4,5- trifosfat duyarlı Ca+2 salıveren kanalı bloke ederek sarkoplazmik redikulumdan Ca+2 salıverilmesini azaltarak etki gösterir (32) (Şekil 2). cGMP ile indüklenen Ca+2 desentizazyonu ise RhoA- bağımlı yolağın inhibisyonu üzerinden miyozin-hafif zincirin fosfataz aktivititesini stimule ederek oluşmaktadır (33). Bunlara ek olarak NO, guanilat siklaz ve cGMP’den bağımsız olarak da bazı etkilere aracılık eder. iNOS ile salıverilen yüksek konsantrasyondaki NO tümör hücreleri üzerinde immün efektör molekül olarak bir etkiye sahiptir (34). Aynı zamanda viral replikasyonu önlemede ve çeşitli patojenlerin eliminasyonunda da benzer etkiye sahiptir. Hatta NO’ nun fungus, parazitler, Mycobacterium tüberculosis’ü içeren bakteriler üzerinde öldürücü veya gelişimin inhibe edici etkiye sahip olduğu da bildirilmiştir (34,35). Bu etkisinde ribonükleotid redüktaz’ın inaktivasyonu ile DNA sentez inhibisyonu ve DNA deaminasyonu üzerinden gerçekleşmektedir (36,37). NO’nun pek çok moleküler hedef ile etkileşimi onun parçalanma ve inaktivasyonun önemli bir yolağını oluşturmaktadır. NO’nun en önemli etkileşimi süperoksit anyonu (O2 - ) ile birleşerek potent sitotoksik etkili peroksinitrit anyonu (ONOO- ) oluşturmasıdır (38). NO’nun in vivo olarak diğer bir önemli inaktivasyon mekanizması ise moleküler oksijen ile birleşerek nitrit (NO2) ve oksidazyonu ile nitrat (NO3) oluşumudur (39). NO’nun aynı zamanda albumin ve doku plazminojen aktivatörleri gibi tiyol içeren bileşikler ile etkileşerek NO’nun depo veya taşıyıcı formu olarak davranan S-nitrozotiyol (RSNO) formu oluşturduğu da gösterilmiştir (40).

                      Solunum yollarında NO’nun fizyolojik rolü
                      NO ve bronkodilatasyon


                      Yarım asırdan daha uzun bir süre önce nitratların deney hayvanlarında bronşiyal gevşeme oluşturdukları bildirilmiştir (41). Bununla birlikte nitrovazodilatörlerin bronkodilatör etkileri için yapılan klinik çalışmaların sonuçları birbiriyle uyumluluk göstermemektedir (42,43, 44,45). Gruetter ve diğ. (46) nitrovazodilatörlerin izole solunum yolu düz kasında guanilat siklazı aktive ederek ve cGMP düzeylerini artırarak gevşeme oluşturduğunu göstermiştir. Anestezi altındaki kobaylarda metakolin ile indüklenen bronkokonstriksiyonun inhale edilen NO ile konsantrasyona-bağımlı (5-300 ppm) bir şekilde azaldığı bildirilmiştir (47). Bununla birlikte NO’nun yüksek konsantrasyonlarının ise (300 ppm) bazal tonusda ufak


                      Şekil 2 NO etki mekanizmasının şematik gösterimi. O2 ve/veya ventilasyon varlığında NOS aktive olur ve NO sentezlenir. NO çözünür ve membrana-bağlı guanilat siklazı aktive eder ve siklik guanozin monofosfat (cGMP) sentezlenir. cGMP, cGMP-kinazı aktive eder. Bu enzim çeşitli mekanizmaları aktive ederek hücre içi Ca+2 konsantrasyonunu düşürür ve vazodilatasyon oluşur (J.Am. Coll. Cardiol. 2004: 43:68S-72S’den alınmıştır).

                      bir bronkodilatasyon oluşturduğu gösterilmiştir. Anestezi altında ve mekanik olarak ventile edilen tavşanlarda solunum havasına eklenen 80 ppm NO’nun nebulizasyonla uygulanan metakolin’in oluşturduğu rezistans artışını önlediği gösterilmiştir. Bununla birlikte NO pulmoner kompliyansda bir değişiklik oluşturmamıştır (48). Bu sonuçlar NO’nun küçük solunum yollarına göre, daha büyük solunum yollarında kasılma yanıtlarını önlediğini düşündürmektedir (48). 80 ppm konsantrasyonda inhale edilen NO’nun kronik obstrüktif akciğer hastalıklı (KOAH) ve normal bireylerde etki oluşturmadığı, astımlı hastalarda ise ufak bir bronkodilatör etki oluşturduğu gösterilmiştir (49). NO-bağımlı solunum yolları gevşemesinin kısmen guanilat siklaz ve PKG aracılı Kca kanallarının aktivasyonu ile olduğu bildirilmektedir (50). Bununla birlikte cGMP’ye bağımlı mekanizmalar aracığı ile solunum yolları düz kas hücrelerinin sarkoplazmik retikulumdan Ca+2 salıverilmesinin inhibisyonun da bu gevşemeye aracılık ettiği gösterilmiştir (51). Son zamanlarda guanilat siklaz aktivasyonundan başka mekanizmanında NO gevşemelerine aracılık edebileceği bildirilmektedir (52,53,54,55,56). RSNO’lar normal bireylerde solunum yollarının tonusunu etkileyecek yeterli konsantrasyonlarda solunum yollarında bulunmaktadır. Perkins ve diğ. (55) nitrozotiyoller ile indüklenen gevşemenin cGMP’den bağımsız bir mekanizma ile kasılmayı regüle eden proteinler üzerindeki tiyollerin geri dönüşümlü oksidasyonu ile olabileceğini göstermişlerdir (Şekil 3). Bronkomotor tonusu regüle eden kolinerjik ve adrenerjik sistemin yanı sıra solunum yollarında NANK bir sistem de bulunmaktadır. Son yıllarda yapılan çalışmalar NO’nun iNANK’in nörotransmiteri olarak davrandığını bildirmektedir. İmmunohistokimyasal çalışmalar ile nNOS’un kobay ve insan solunum yolları


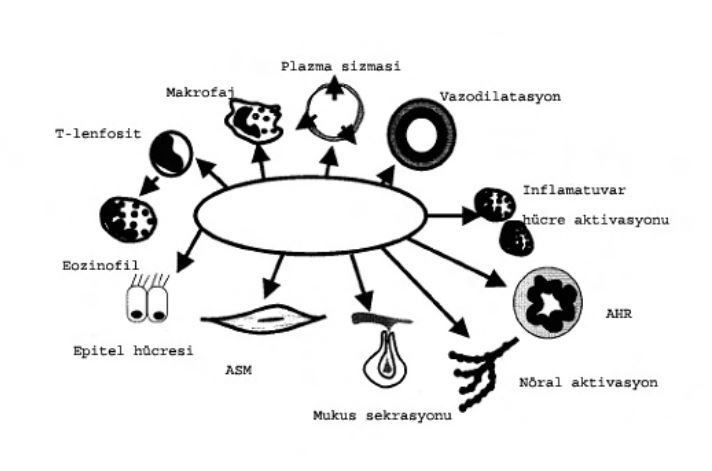
                      Şekil 3. NO’nun pulmoner etkileri. NO solunum yolları ve vasküler düz kas tonusunun modülasyonunu regüle eder. AHR: solunum yolları hiperreaktivitesi, ASM: solunum yolları düz kası (Pul. Pharmacol.& Ther. 15:73-81,2002’den alınmıştır).

                      sinirlerinde lokalize olduğunu gösterilmiştir. NOS immunoreaktivitesi gösteren sinirler solunum yollarının damarlarında, düz kas hücrelerinde ve lamina propriada bulunmaktadır (57,58) (Şekil 3). İnsanda santral ve periferal solunum yollarında iNANK yanıtlarına tamamen NO’nun aracılık ettiği gösterilirken (59), kobay trakeasında ise bu yanıtlara NO’nun yanı sıra vazoaktif intestinal peptid’de aracılık etmektedir (60). Bununla birlikte NOS’un inhibisyonu nöral asetilkolin salıverilmesini etkilemeksizin kolinerjik nöral bronkokonstriksiyonu potansiyalize etmektedir. Bu sonuçlar nNOS kaynaklı NO’nun kavşak sonrası etkileri ile eksitatör kolinerjik yolağın fonksiyonel bir antagonisti olduğunu göstermektedir (61). Nöral NO ile indüklenen gevşemenin solunum yollarının alerjik inflamasyonunda bozulduğu bildirilmiştir (62).

                      NO ve pulmoner, bronşiyal dolaşım

                      Sistemik ve pulmoner arterlerin dolaşım sistemlerinin farklı fonksiyonları gereği farklı morfolojik yapılara sahip oldukları bilinmektedir. Pulmoner vasküler yatağın fetüs ve yeni doğan pulmoner dolaşımı arasında da farklılıklar bulunmaktadır. Fetüs pulmoner vasküler tonusu sistemik dolaşıma benzer şekilde yüksektir. Neonatal dönemde ise yüksek olan pulmoner vasküler tonusun süratle düştüğü, infantlarda, çocuklarda ve erişkinlerde ise pulmoner vasküler tonusun minimal düzeye geldiği bilinmektedir. Pulmoner vasküler yatakta düşük vazomotor tonusu devam ettirmenin mekanizması tam olarak aydınlatılamamıştır. L-arjinin analogları olan NG-nitro-L-arjinin metil ester (L-NAME) ve NGmonometil-L-arjinin’in (L-NMMA) pulmoner arter halkalarında kasılma yanıtlarını arttırdığı bildirilmiştir (63,64,65). Bu bulgular NO’nun düşük bazal tonusu devam ettirmede önemli olabileceğini düşündürmektedir. İnsanda LNMMA’ın pulmoner ve sistemik vasküler reziztansı arttırması hem pulmoner hem de sistemik vasküler yatağın vazokonstriktör tonusunun NO ile regüle edildiğini akla getirmektedir. Bununla birlikte L-NAME’in intakt kedi, köpek ve tavşanda bazal pulmoner vasküler tonusu anlamlı olarak arttırdığı da bildirilmiştir (66,67,68,69). NO’nun bazal oluşumunun düşük bazal vasküler tonusun oluşmasına katkısı bildirilmesine rağmen aynı türler arasında farklı sonuçlarda bildirilmiştir (70). L-NAME’in düşük pulmoner vazomotor tonusu etkileyebilirliğinin NO oluşumunu inhibe etmesinden dolayı olacağına dair çalışmalar bulunmaktadır (68). Bu amaçla yapılan intakt spontan olarak nefes alan sıçanlarda Larjinin analoğu L-NAME’in in vitro izole perfüze sıçan akciğerlerindeki sonuçlardan farklı olarak pulmoner arter basıncını artırdığı, L-NAME’in asetilkolin ve bradikinine pulmoner vazodilatör cevapları bloke ederken, nitrogliserin cevabını ise artırdığı gösterilmiştir. Deneylerden elde edilen bu sonuçlar aktif olarak indüklenen pulmoner hipertansiyonun büyük oranda NO kontrolü altında olduğunu düşündürmektedir (71). NO’nun pulmoner arterlerde görülen iNANK gevşeme yanıtların ana mediyatörü olabileceği de bildirilmektedir. Ön kasılma oluşturulmuş sıçan pulmoner arter halkalarında elektriksel alan stimulasyonu frekans-bağımlı, tetrodotoksin’e duyarlı gevşeme yanıtları oluşturmaktadır. Adrenerjik ve kolinerjik antagonistlerden de etkilenmeyen bu gevşeme yanıtlarında iNANK mekanizmanın ana bileşeni olabileceği ve bu gevşemelere NO’nun aracılık edebileceği de deneysel olarak gösterilmiştir (72). Endotel hücrelerinden pulmoner dolaşıma salıverilen NO’nun vasküler bazal tonusu düzenlemesi yanı sıra hipoksik vazokonstriksiyonu da ortadan kaldırdığı bildirilmiştir (73). Bununla birlikte NO salınımı kronik hipokside azalmaktadır (74). eNOS izoformunun sağlıklı bireylerin pulmoner damar endotel hücrelerinde bulunduğu, primer pulmoner hipertansiyonlu hastalarda eNOS ekspresyonun down regüle olduğu bununda pulmoner vazokonstriksiyona ve düz kas dokusunda artışa neden olduğu ileri sürülmektedir (75). KOAH’lı ve fibrozisli hastaların pulmoner arterlerinde endotel kaynaklı NO salıverilmesinin bozulduğu bildirilmiştir (76). Kalp-akciğer transplantasyonuna giden hastalarından alınan pulmoner arterlerde de endotel-bağımlı gevşeme yanıtlarının bozulduğu gösterilmiştir (77). Endojen NO’nun bazal bronşiyal vasküler tonusu regüle ettiği, ekzojen NO’nun ise sigara dumanını inhalasyondan sonra görülen bronşiyal vazodilatasyondan sorumlu olduğu bildirilmiştir (78). Solunum yolları vaskülaritesinin in vivo olarak hayvanlara NO inhale ettirildiğinde de dilate olduğu gösterilmiştir (79). Endojen NO’nun vasküler permabilite üzerindeki etkisi hakkında ise çelişkili sonuçlar vardır. Son çalışmalar NOS inhibitörlerinin P maddesi ve lökotrien D4 ile indüklenen solunum yolları mikrovasküler plazma sızıntısını inhibe ettiğini göstermiştir. Bu sonuç çeşitli inflamatuvar mediyatörler ile indüklenen plazma ekstravazasyonunda endojen NO’nun önemli bir role sahip olduğunu düşündürmektedir (80) (Şekil 3).

                      Solunum yollarında NO’nun patofizyolojik olaylardaki rolü
                      NO ve solunum yolları inflamasyonu


                      Artmış NO oluşumunun atopik astımın karakteristliği olan eozinofilik inflamasyonla ilişkili olabileceği bildirilmektedir. Bununla birlikte NOS II’nin astımlı hastalarda up regüle olduğu ve bu durumda astımlı hastaların solunum yollarında özellikle de makrofaj ve epitel hücrelerinde NOS II protein ve mRNA ekspresyonunda artış olduğu gösterilmiştir (81). Bu indüksiyonun proinflamatuvar sitokinler, oksidanlar ve diğer inflamatuvar mediyatörlerin etkisiyle oluşabileceği bildirilmiştir (Şekil 4). Epitel hücrelerinde ve alveolar makrofajlarda NO’nun artmış düzeylerine paralel olarak NO’nun solunum yolları lümenine daha fazla difüze olduğu ve astımlı hastaların solunum havasında NO konsantrasyonun arttığı tespit edilmiştir (82). Yapılan çalışmalarda NO düzeylerinin astım atakları sırasında ve alerjene geç yanıtta solunum havasında arttığı ortaya konulmuştur (83). Solunum havasındaki artmış NO düzeylerinin inhale kortikosteroid tedavisinden sonra düştüğü gösterilmiştir (84,85). KOAH atakları sırasında da hastaneye yatırılan hastaların solunum havasında da NO düzeylerinin arttığı bildirilmiştir (86). İlginç olarak solunum havasındaki NO düzeyleri steroid tedavisi alan hastalarda aylar sonra kontrol değerlerine dönebilmektedir. Bu durum steroide yüksek duyarlılık gösteren astımlı hastalar ile karşılaştırıldığında KOAH’da farklı inflamatuvar mekanizmaların rol oynayabileceğini akla getirmektedir (86). Solunum havasında NO düzeylerinin artışı rinitis, bronşiyektazi, aktif pulmoner sarkoidozisde de bildirilmektedir (87,88,89). Primer pulmoner hipertansiyonlu hastalarda ise solunum havasındaki NO düzeylerinin sağlıklı bireyler ile benzerlik gösterdiği bildirilmektedir (90). Bu durum NO’nun bazal salınımının patolojik durumda da devam ettiğini göstermektedir. Ancak sistemik hastalığa (Ör: siroz, kronik kalp yetmezliği) ikincil olarak gelişen pulmoner hipertansiyonda ise NO oluşumunun hem istirahat hem de ekzersiz durumunda azaldığı görülmüştür (91,92,93). Kalp yetmezlikli ve pulmoner


                      Şekil 4. Solunum yollarında inhale edilen bileşikler veya proinflamatuvar mediyatörlerin reaktif oksijen türevleri ve nitrojen türevlerini oluşturmasının şematik gösterimi. Stimulusla birlikte solunum yollarının inflamatuvar hücreleri NADPH oksidaz aracılığı ile süperoksid (O2 - ) veya iNOS ekspresyonunda artış ile yüksek konsantrasyonda NO oluşturur. NO, O2 - ile reaksiyona girerek peroksinitrit (ONOO- ) oluşturur. Peroksinitrit, nitrotirozin rezidülerinin oluşumunu indükler. Bununla birlikte tirozin nitrasyonu, hipokloroz asid (HOCl) ve miyeloperoksidaz veya eozinofil peroksidazla ilişkili nitritle proteinlerin maruz kalmasıyla oluşur. Yüksek konsantrasyonda oluşan NO, peroksinitrit ve tirozin nitrasyon çeşitli patofizyolojik etkiler oluşturur (Physiol. Rev. 84:731-765, 2004’den alınmıştır).

                      hipertansiyonlu hastalarda NO pulmoner vasküler direnç ile negatif korelasyondadır (94). Pulmoner hipertansiyonda görülen azalmış NO bu durumda bozulmuş endotelyal NO salınımını veya distal pulmoner arterlerinin muskularizasyonundaki artmayı yansıtmaktadır (95). Deneysel çalışmalar NO’nun patojenlere karşı non-spesifik savunma mekanizmalarında rol oynayabileceğini, makrofajlar ve T hücreleri arasında iletimi sağlayacağını düşündürmektedir (96).

                      Son sözler

                      Solunum sisteminde NO, solunum yolları fonksiyonun endojen modülasyonundan, pulmoner vasküler tonusun regülasyonuna, patofizyolojik durumlarda ise proinflamatuvar ve immunomodülatör mediyatör olarak çok çeşitli rollere sahiptir. Solunum sisteminde NO’nun rolü hakkında yapılan çalışmalar pek çok önemli mekanizmanın aydınlatılmasına aracılık etmektedir.

                      Kaynaklar

                      1. Furchgott RF and Zawadzki JV. The obligatory role of endothelial cells in the relaxation of arterial smooth muscle by acetylcholine. Nature 288: 373– 376, 1980. 2. Ignarro LJ, Buga GM, Wood KD, Byrns RE, and Chaudhuri G. Endothelium-derived relaxing factor produced and released from artery and vein is nitric oxide. Proc Natl Acad Sci USA 84: 9265–9269, 1987. 3. Palmer RM, Ferrige AG, and Moncada S. Nitric oxide release accounts for the biological activity of endothelium-derived relaxing factor. Nature 327: 524–526, 1987. 4. Moncada S and Higgs A. The L-arginine-nitric oxide pathway. N Engl J Med 329: 2002–2012, 1993. 5. Barnes PJ and Belvisi MG. Nitric oxide and lung disease. Thorax 48: 1034–1043, 1993. 6. Gaston B, Drazen JM, Loscalzo J, and Stamler JS. The biology of nitrogen oxides in the airways. Am J Respir Crit Care Med 149: 538–551, 1994. 7. Jorens PG, Vermeire PA, and Herman AG. LArginine-dependent nitric oxide synthase: a new metabolic pathway in the lung and airways. Eur Respir J 6: 258–266, 1993. 8. Gustafsson LE, Leone AM, Persson MG, Wiklund NP, and Moncada S. Endogenous nitric oxide is present in the exhaled air of rabbits, guinea pigs and humans. Biochem Biophys Res Commun 18: 852–857, 1991. 9. Alving K, Weitzberg E, and Lundberg JM. Increased amount of nitric oxide in exhaled air of asthmatics. Eur Respir J 6: 1368–1370, 1993. 10. Gaston B, Drazen JM, Loscalzo J, and Stamler JS. The biology of nitrogen oxides in the airways. Am J Respir Crit Care Med 149: 538–551, 1994. 11. Jorens PG, Vermeire PA, and Herman AG. LArginine-dependent nitric oxide synthase: a new metabolic pathway in the lung and airways. Eur Respir J 6: 258–266, 1993. 12. Barnes PJ, Belvisi MG. Nitric oxide and lung disease. Thorax 1993;48:1034–43. 13. Hobbs AJ, Ignarro LJ. The nitric oxide-cyclic GMP signal transduction 1. system. In: Zapol WM, Bloch KD, eds. Nitric oxide and the lung. New York: Marcel Dekker, 1–57, 1997. 14. Bult H, Boeckxstaens GE, Pelckmans PA, Jordaens FH, Van Maercke YM, and Herman AG. Nitric oxide as an inhibitory non-adrenergic noncholinergic neurotransmitter. Nature 345: 346–347, 1990. 15. Fischer A, Mundel P, Mayer B, Preissler U, Phillipin B, and Kummer W. Nitric oxide synthase in guinea pig lower airway innervation. Neurosci Lett 149: 157–160, 1993. 16. Hamid Q, Springall DR, Riveros-Moreno V, Chanez P, Howarth P, Redington A, Bousquet J, Godard P, Holgate S, and Polak JM. Induction of nitric oxide synthase in asthma. Lancet 342: 1510–1513, 1993. 17. Kobzik L, Bredt DS, Lowenstein CJ, Drazen J, Gaston B, Sugarbaker D, and Stamler JS. Nitric oxide synthase in human and rat lung: immunocytochemical and histochemical localization. Am J Respir Cell Mol Biol 9: 371–377, 1993. 18. Robbins RA, Barnes PJ, Springall DR, Warren JB, Kwon OJ, Buttery LD, Wilson AJ, Geller DA, and Polak JM. Expression of inducible nitric oxide in human lung epithelial cells. Biochem Biophys Res Commun 203: 209–218, 1994. 19. Shaul P, North AJ, Wu LC, Wells LB, Brannon TS, Lau KS, Michel T, Margraf LR, and Star RA. Endothelial nitric oxide synthase is expressed in cultured human bronchiolar epithelium. J Clin Invest 94: 2231–2236, 1994. 20. Forstermann U, Schmidt HH, Pollock JS, Sheng H, Mitchell JA, Warner TD, Nakane M, and Murad F. Isoforms of nitric oxide synthase: characterization and purification from different cell types. Biochem Pharmacol 42: 1849–1857, 1991. 21. Filep JG, Battistini B, and Sirois P. Induction by endothelin-1 of epithelium-dependent relaxation of guinea-pig trachea in vitro: role for nitric oxide. Br J Pharmacol 109: 637–644, 1993. 22. Michel T, Feron O. Nitric oxide synthases: which, where, how, and why? J Clin Invest 1997;100: 2146–52. 23. Ricciardola F.L.M, Sterk P.J, Gaston B, Folkerts G. Nitric oxide in health and disease of the respiratory system. Physiol. Rev. 84:731-765, 2004. 24. Guo FH, DeRaeve HR, Rice TW, Stuehr DJ, Thunnissen FB, and Erzurum SC. Contiuous nitric oxide synthesis by inducible nitric oxide synthase in normal human airway epithelium in vivo. Proc Natl Acad Sci USA 92: 7809–7813, 1995. 25. Kobzik L, Bredt DS, Lowenstein CJ, Drazen J, Gaston B, Sugarbaker D, and Stamler JS. Nitric oxide synthase in human and rat lung: immunocytochemical and histochemical localization. Am J Respir Cell Mol Biol 9: 371–377, 1993. 26. Ward JK, Barnes PJ, Tadjkarimi S, Yacoub MH, and Belvisi MG. Evidence for the involvement of cGMP in neural bronchodilator responses in human trachea. J Physiol 483: 525–536, 1995. 27. Gaston B, Drazen JM, Jansen A, Sugarbaker DA, Loscalzo J, Richards W, and Stamler JS. Relaxation of human bronchial smooth muscle by S-nitrosothiols in vitro. J Pharmacol Exp Ther 268: 978–984, 1994. 28. Janssen LJ, Premji M, Lu-Chao H, Cox G, and Keshavjee S. NO- but not NO radical relaxes airway smooth muscle via cGMP-independent release of internal Ca+2 Am J Physiol Lung Cell Mol Physiol 278: L899–L905, 2000. 29. Perkins WJ, Pabelick C, Warner DO, and Jones KA. cGMPindependent mechanism of airway smooth muscle relaxation induced by Snitrosoglutathione. Am J Physiol Cell Physiol 275: C468–C474, 1998. 30. Thompson D and Altiere R. Differential susceptibility of tracheal contraction to nonadrenergic noncholinergic relaxation. J Pharmacol Exp Ther 284: 19–24, 1998. 31. Ignarro LJ and Kadowitz PJ. The pharmacological and physiological role of cyclic GMP in vascular smooth muscle relaxation. Annu Rev Pharmacol Toxicol 25: 171–191, 1985. 32. Carvajal JA, Germain AM, Huidobro-Toro JP, and Weiner CP. Molecular mechanism of cGMPmediated smooth muscle relaxation. J Cell Physiol 184: 409–420, 2000. 33. Sauzeau V, Le Jeune H, Cario-Toumaniantz C, Smolenski A, Lohmann SM, Bertoglio J, Chardin P, Pacaud P, and Loirand G. Cyclic GMP-dependent protein kinase signaling pathway inhibits Rhoinduced Ca+2 sensitization of contraction in vascular smooth muscle. J Biol Chem 275: 21722– 21729, 2000. 34. Hibbs JB, Taintor RR, Vavrin Z, and Rachlin EM. Nitric oxide: a cytotoxic activated macrophages effector molecule. Biochem Biophys Res Commun 157: 87–94, 1988. 35. Karupiah G, Xie Q, Buller RML, Nathan CF, Duarte C, and MacMicking JD. Inhibition of viral replication by interferongamma induced nitric oxide synthase. Science 261: 1445–1448, 1993. 36. Kwon NS, Stuehr DJ, and Nathan CF. Inhibition of tumor cell ribonucleotide reductase by macrophage derived nitric oxide. J Exp Med 174: 761–768, 1991. 37. Wink DA, Kasprzak KS, Maragos CM, Elespuru RK, Misra M, Dunams TM, Cebula AC, Koch Wh, Andrews AW, Allen JS, and Keefer LK. DNA deaminating ability and genotoxicity of nitric oxide and its progenitors. Science 254: 1001–1003, 1991. 38. Radi R, Beckman JS, Bush KM, and Freeman BA. Peroxynitriteinduced membrane lipid peroxidation: the cytotoxic potential of superoxide and nitric oxide. Arch Biochem Biophys 288: 481–487, 1991. 39. Ignarro LJ, Fukuto JM, Griscavage JM, et al. Oxidation of nitric oxide in aqueous solution to nitrite but not nitrate, comparison with enzymatically formed nitric oxide from L-arginine. Proc Natl Acad Sci USA 1993;90:8103–7. 40. Stamler JS, Simon DI, Osborne JA, et al. Snitrosylation of proteins with nitric oxide: synthesis and characterization of biologically active compounds. Proc Natl Acad Sci USA1992;89:444– 8. 41. Goodman LS and Gilman A. The Pharmacological Basis of Therapeutics. Philadelphia, PA: Lea & Febiger, 1936, p. 631. 42. Byrick RJ, Hobbs EG, Martineau R, and Noble WH. Nitroglycerin relaxes large airways. Anesth Anal 62: 421–425, 1983. 43. Kennedy T, Summer WR, Sylvester J, and Robertson D. Airway response to sublingual nitroglycerin in acute asthma. JAMA 246: 145–147, 1981. 44. Miller WC and Shultz TF. Failure of nitroglycerin as a bronchodilator. Am Rev Respir Dis 120: 471, 1979. 45. Okayama M, Sasaki H, and Takishima T. Bronchodilator effect of sublingual isosorbide dinitrate in asthma. Eur J Clin Pharmacol 26: 151– 155, 1984. 46. Gruetter CA, Childers CE, Bosserman MK, Lemke SM, Ball JG, and Valentovic MA. Comparison of relaxation induced by glyceryl trinitrate, isosorbide dinitrate, and sodium nitroprusside in bovine airways. Am Rev Respir Dis 139: 1192–1197, 1989. 47. Dupuy PM, Shore SA, Drazen JM, Frostell C, Hill WA, and Zapol WM. Bronchodilator action of inhaled nitric oxide in guinea pigs. J Clin Invest 90: 421–428, 1992. 48. Hogman M, Frostell C, Arnberg H, and Hedenstierna G. Inhalation of nitric oxide modulates methacholine-induced bronchoconstriction in the rabbit. Eur Respir J 6: 177–180, 1993. 49. Hogman M, Frostell C, Hedenstrom H, and Hedenstierna G. Inhalation of nitric oxide modulates adult human bronchial tone. Am Rev Respir Dis 148: 1474–1478, 1993. 50. Yamakage M, Hirshman CA, and Croxton TL. Sodium nitroprusside stimulates Ca+2 activated Kchannels in porcine tracheal smooth muscle cells. Am J Physiol Lung Cell Mol Physiol 270: L338– L345, 1996. 51. Kannan MS, Prakash YS, Johnson DE, and Sieck GC. Nitric oxide inhibits calcium release from sarcoplasmic reticulum of porcine tracheal smooth muscle cells. Am J Physiol Lung Cell Mol Physiol 272: L1–L7, 1997. 52. Bannenberg G, Xue J, Engman L, Cotgreave I, Molde´us P, and Ryrfeldt A. Characterization of bronchodilator effects and fate of S-nitrosothiols in the isolated perfused and ventilated guinea pig lung. J Pharmacol Exp Ther 272: 1238–1245, 1995. 53. Gaston B, Drazen JM, Jansen A, Sugarbaker DA, Loscalzo J, Richards W, and Stamler JS. Relaxation of human bronchial smooth muscle by S-nitrosothiols in vitro. J Pharmacol Exp Ther 268: 978–984, 1994. 54. Jansen A, Drazen J, Osborne JA, Brown R, Loscalzo J, and Stamler JS. The relaxant properties in guinea pig airways of S-nitrothiols. J Pharmacol Exp Ther 261: 154–160, 1992. 55. Perkins WJ, Pabelick C, Warner DO, and Jones KA. cGMPindependent mechanism of airway smooth muscle relaxation induced by Snitrosoglutathione. Am J Physiol Cell Physiol 275: C468–C474, 1998. 56. Thompson D and Altiere R. Differential susceptibility of trachealcontraction to nonadrenergic noncholinergic relaxation. J Pharmacol Exp Ther 284: 19–24, 1998. 57. Fischer A, Mundel P, Mayer B, et al. Nitric oxide synthase in guinea pig lower airway innervation. Neurosci Lett 149:157–60, 1993. 58. Fischer A, Mayer B, Kummer W. Nitric oxide synthase in vagal sensory and sympathetic neurons innervating the guinea-pig trachea. J Auton Nerv Syst 56:157–60;1996. 59. Belvisi MG, Stretton CD, Yacoub M, et al. Nitric oxide is the endogenous neurotransmitter of bronchodilator nerves in humans. Eur J Pharmacol 210:221–2, 1992. 60. 43 Li CG, Rand MJ. Evidence that part of the NANC relaxant response of guinea-pig trachea to electrical field stimulation is mediated by nitric oxide. Br J Pharmacol 102:91–4, 1991. 61. Ward JK, Belvisi MG, Fox AJ, et al. Modulation of cholinergic neural bronchoconstriction by endogenous nitric oxide and vasoactive intestinal peptide in human airways in vitro. J Clin Invest 92:736–42, 1993. 62. Miura M, Yamauchi H, Ichinose M, et al. Impairment of neural nitric oxide-mediated relaxation after antigen exposure in guinea pig airways in vitro. Am J Respir Crit Care Med156:217–22, 1997. 63. Archer, S. L., J. P. Tolins, L. Raij, and E. K. Weir. Hypoxic pulmonary vasoconstriction is enhanced by inhibition of the synthesis of endothelium derived relaxing factors. Biochem. Biophys. Res. Commun. 164: 1198–1205, 1989. 64. Dinh-Xuan, A. T., T. W. Higenbottam, C. A. Chelland, J. Pepke-Zaba, G. Cremona, A.Y. Butt, S. R. Large, F. C.Wells, and J.Wallwork. Impairment of endothelium-dependent pulmonary artery relaxation in chronic obstructive lung disease. N. Engl. J. Med. 324: 1539–1547, 1991. 65. Ignarro, L. J., R. E. Byrns, and K. S. Woods. Endothelium dependent modulation of a cGMP levels and intrinsic smooth muscle tone in isolated bovine intrapulmonary artery and vein.Circ. Res. 160: 82–92, 1987. 66. Lippton, H. L., Q. Hao, and A. Hyman. L-NAME enhances pulmonary vasoconstriction without inhibiting EDRF-dependent vasodilation. J. Appl. Physiol. 73: 2432–2439, 1992. 67. McMahon, T. J., J. S. Hood, J. A. Bellan, and P. J. Kadowitz. Nv-nitro-L-arginine methyl ester selectively inhibits pulmonary vasodilator responses to acetylcholine and bradykinin. J. Appl. Physiol. 71: 2026–2031, 1991. 68. Persson, M. G., L. E. Gustafsson, N. P. Kiklund, S. Moncada, and P. Hedquist. Endogenous nitric oxide as a probable modulator of pulmonary circulation and hypoxic pressor in vivo. Acta Physiol. Scand. 140: 449–457, 1990. 69. Nishiwaki, K., D. P. Nyhan, P. Rock, P. M. Desai, W. P. Peterson, C. G. Pribble, and P. A. Murray. Nv-nitro- L-arginine and pulmonary vascular pressure-flow relationship in conscious dogs. Am. J. Physiol. 262 (Heart Circ. Physiol. 31): H1331– H1337, 1992. 70. Perrella, M. A., F. L. Hildebrand, K. B. Margulies, and J. C. Burnett. Endothelium-derived relaxing factor in regulation of basal cardiopulmonary and renal function. Am. J. Physiol. 261 (Regulatory Integrative Comp. Physiol. 30): R323–R328, 1991. 71. Hyman A.L., Hao Q., Tower A., Gümüşel B., Lippton H: Use of novel catheterization technique for measurement in vivo of pulmonary vascular responses. Am.J. Physiol.274 (4 Pt 2): H1218- 1229, 1998. 72. Gümüşel B., Orhan D., Tolunay Ö., Uma S: The role of nitric oxide in mediating non-adrenergic noncholinergic relaxationin rat pulmonary artery. Nitric Oxide: Biology and Chemistry 5(4): 296-301, August 2001. 73. Persson MG, Gustafsson LE, Wiklund NP, Moncada S, and Hedqvist P. Endogenous nitric oxide as a probable modulator of pulmonary circulation and hypoxic pressor response in vivo. Acta Physiol Scand 140: 449–457, 1990. 74. Adnot S, Raffestin B, Eddamibi S, Braquet P, and Chabrier PE. Loss of endothelium-dependent relaxant activity in the pulmonary circulation of rats exposed to chronic hypoxia. J Clin Invest 87: 155– 162, 1991. 75. Giaid A and Saleh D. Reduced expression of endothelial nitric oxide synthase in the lungs of patients with pulmonary hypertension. N Engl J Med 333: 214–221, 1995. 76. Dinh-Xuan AT, Higenbottam TW, Clelland CA, Pepke-Zaba J, Cremona G, Butt AY, Large SR, Wells FC, and Wallwork J. Impairment of endothelium-dependent pulmonary artery relaxation in chronic obstructive lung disease. N Engl J Med 324: 1539–1547, 1991. 77. Cremona G, Dinh-Xuan AT, and Higenbottam T. Endothelium derived relaxing factor and the pulmonary circulation. Lung 169:185–202, 1991. 78. Alving K, Fornhem C, and Lundberg JM. Pulmonary effects of endogenous and exogenous nitric oxide in the pig: relation to cigarette smoke inhalation. Br J Pharmacol 110: 739–746, 1993. 79. Charan NB, Johnson S, Lakshminarayan S, Thompson WH, and Carvalho P. Nitric oxide and adrenergic agonist-induced bronchial arterial vasodilation. J Appl Physiol 82: 686–692, 1997. 80. Kageyama N, Miura M, Ichinose M, Tomaki M, Ishikawa J, Ohuchi Y, Endoh N, and Shirato K. Role of endogenous nitric oxide in airway microvascular leakage induced by inflammatory mediators. Eur Respir J 10: 13–19, 1997. 81. Hamid Q, Springall D R, Riveros-Moreno V, Chanez P, Howarth P, Redington A, Bousquet J, Godard P, Holgate S, ways. Polak J M. Induction of nitric oxide synthase in asthma. Lancet 342: 1510– 151, 1993. 82. Barnes P J, Kharitonov S A. Exhaled nitric oxide: a new lung function test [editorial]. Thorax 51: 233– 237, 1996. 83. Massaro A F, Gaston B, Kita D, Fanta C, Stamler J S, Drazen J M. Expired nitric oxide levels during treatment of acute asthma. Am J Respir Crit Care Med 152: 800–803,1995. 84. Kharitonov S A, Yates D H, Barnes P J. Inhaled glucocorticoids decrease nitric oxide in exhaled air of asthmatic patients. Am J Respir Crit Care Med 153: 454–457, 1996. 85. Kharitonov S A, Yates D H, Chung K F, Barnes P J. Changes in the dose of inhaled steroid affect exhaled nitric oxide levels in asthmatic patients. Eur Respir J 9: 196–201, 1996. 86. Agusti AG, Villaverde JM, Togores B, and Bosch M. Serial measurements of exhaled nitric oxide during exacerbations of chronic obstructive pulmonary disease. Eur Respir J 14: 523–528, 1999. 87. Henriksen AH, Sue-Chu M, Lingaas HT, Langhammer A, and Bjermer L. Exhaled and nasal NO levels in allergic rhinitis: relation to sensitization, pollen season and bronchial hyperresponsiveness. Eur Respir J 13: 301–306, 1999. 88. Kharitonov SA, Wells AU, O’Connor BJ, Cole PJ, Hansell DM, Logan-Sinclair RB, and Barnes PJ. Elevated levels of exhaled nitric oxide in bronchiectasis. Am J Respir Crit Care Med 151: 1889–1893, 1995. 89. Moodley YP, Chetty R, and Lalloo UG. Nitric oxide levels in exhaled air and inducible nitric oxide synthase immunolocalization in pulmonary sarcoidosis. Eur Respir J 14: 22–827, 1999. 90. Cremona G, Higenbottam T, Borland C, Mist B: Mixed expired nitric oxide in primary pulmonary hypertension in relation to lung diffusion capacity. QJM, 87: 547-551, 1994. 91. Kharitonov SA, Cailes JB, Black CM et al: Decreased nitric oxide in the exhaled air of patients with systemic sclerosis with pulmonary hypertension. Thorax, 52: 1051-1055, 1997. 92. Clini E, Volterrani M, Pagani M et al: Endogenous nitric oxide in patients with chronic heart failure (CHF): relation to functional impairment and nitratecontaining therapies. Intern J Cardiol, 73: 123-130, 2000. 93. Riley MS, Porszasz J, Miranda J et al: Exhaled nitric oxide during exercise in primary pulmonary hypertension and pulmonary fibrosis. Chest, 111: 44-50, 1997. 94. Sumino H, Sato K, Sakamaki T et al: Decreased basal production of nitric oxide in patients with heart disease. Chest, 113: 317- 322, 1998. 95. Giaid A, Saleh D: Reduced expression of endothelial nitric oxide synthase in the lungs of patients with pulmonary hypertension. N Engl J Med, 333: 214-221,1995. 96. Barnes PJ, Liew FY. Nitric oxide and asthmatic inflammation. Immunol Today 16:128–30, 1995.
                      Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                      Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                      Yorum yap


                      • #41
                        Nitrik oksit ve inflamasyon
                        Doç. Dr. Alper B. İSKİT
                        Hacettepe Üniversitesi, Tıp Fakültesi, Farmakoloji Ab.D., Ankara


                        1. İnflamasyon
                        İnflamasyon, inflamatuar bir stimulusa cevap olarak elde edilen dinamik, olaylar zinciridir. İnflamasyon alanında vazodilatasyonu takiben kan akımı değişiklikleri, damar permeabilite artışı, ödem sıvısı oluşumu, lokal lokosit birikimi gözlenir. Bu birbirini takip eden olayların gelişiminden çeşitli mediatörler sorumludur. İnflamasyonda mediatör çağı 1927 yılında Thomas Lewis’in, histaminin klasik olarak "üçlü cevap" olarak bilinen etkisini tanımlamasıyla başlamıştır. Lewis, dokunun künt travmaya maruz kalmasıyla açığa çıkan histaminin, doğrudan doğruya lokal kan damarlarına etki ederek travma bölgesinde:

                        1. Saniyeler içerisinde kızarıklık,
                        2. 15-30 saniye içinde, travmanın birkaç santimetre çevresine yayılan kırmızılık,
                        3. 2-3 dakika içinde vasküler permeabilite artışına bağlı olarak oluşan lokal ödem geliştiğini tanımlamıştır.

                        Histamin, inflamasyonda rol oynadığı gösterilen ilk mediatörlerden biri olmasına karşın, bu olayda çok sayıda mediatörün katkısının olduğu daha sonra gösterilmiştir. Bradikinin, P maddesi, 5-hidroksitriptamin, prostaglandinler, lökotrienler, PAF, kompleman sistemi ürünleri, trombin … ve nitrik oksit bunlardan başlıcalarıdır. Nitrik oksitin inflamasyonun birçok aşamasında rol oynadığı bilinmektedir. Farklı ajanların uyarısı ile monositler, mast hücreleri, makrofajlar, Kupffer hücreleri ve nötrofiller nitrik oksit sentezleme yeteneklerine sahiptirler. Vazodilatasyon, vasküler permeabilitedeki değişim ve ekstravazasyon, lökosit migrasyonu (aktivasyonu) gibi inflamasyonla beraber giden olaylarda nitrik oksit önemli rol oynar (1).

                        2. Nitrik oksit (NO)

                        Aynı anda farklı hücre türlerinde sentezlenen, otokrin veya parakrin mediatör fonksiyonu gören NO, nitrik oksit sentaz (NOS) enzimi ile sentezlenmektedir. Bilinen üç NOS geninde sekiz DNA sekansı olduğu saptanmıştır: nöral NOS (nNOS), endotelyal NOS (eNOS), indüklenebilir NOS (iNOS). nNOS ve eNOS'a birlikte yapısal NOS (cNOS) denirken, iNOS uyaranlarla indüklenebilme özelliğine sahiptir. Endotoksin ve proinflamatuar sitokinlerin (bazı interlökinler, TNF ve interferon) iNOS'u indükleyerek NO üretimini arttırdığı gösterilmiştir. iNOS vasküler endotelyal hücreler, düz kas hücreleri, makrofajlar ve farklı parankim hücrelerini içeren çeşitli hücrelerce eksprese ve aktive edilmektedir (2). iNOS ekspresyonu için genellikle birkaç saate ihtiyaç vardır. Lipopolisakkaritler ile uyarılan makrofajlarda 2 saat sonra iNOS (mRNA) ve 4 saat sonra iNOS proteini meydana gelmektedir (3).

                        NOS stereospesifik olarak yarı esansiyel amino asit olan L-arjinini substrat olarak kullanmakta ve sonuçta NO ve L-citrulline oluşmaktadır. cNOS ve iNOS arasında bazı önemli farklılıklar vardır. İlk olarak cNOS aktivitesi hücre içine kalsiyum akışına bağlıyken iNOS aktivitesi için istirahat halinde hücre içindeki kalsiyum miktarı yeterlidir. cNOS aktivitesi kalsiyum akışı ile tetiklendiği için aktivite geçicidir ve az miktarda NO üretilir (pikomolar konsantrasyonda). Zıt olarak iNOS aktivitesi uzun sürer ve nanomolar düzeyinde NO oluşur (2).

                        Her iki enzimde NG-monometil-L-arjinin (LNMMA), NG-nitro-L-arjinin-metil ester (LNAME) veya NG-nitro-L-arjinin (L-NNA) gibi guanidin ucundaki değişiklik gösteren L-arjininin tarafından stereospesifik olarak inhibe edilmektedir. iNOS aktivitesi daha çok Larjinin analoğu olan L-canavanin ve aminoguanidin tarafından inhibe edilmektedir. cNOS aktivitesi glukokortikoidlerden etkilenmezken, iNOS indüksiyonu glukokortikoidlerce inhibe edilir. Bununla birlikte iNOS eksprese edildiyse aktivitesi glukokortikoidlerden etkilenmemektedir (3,4). NO aşırı üretimini azaltmanın en uygun yolu NOS için uygun substratı azaltan L-arjinin analogları kullanmaktır. NO'nun birçok etkisi çözünebilir hem içeren guanilat siklaz aktivasyonu ile oluşur. Sonuçta oluşan cGMP, hücreiçi serbest kalsiyum seviyelerinde azalmaya neden olan hücre içi olayların tetiklenmesini sağlamaktadır. NO'nun biyolojik etkileri hücre içi kalsiyum seviyelerini etkileyen maddeler ile yakından ilişkilidir. Serbest oksijen radikali olarak NO oldukça reaktiftir ve birçok madde ile etkileşebilir. NO kanda hemoglobinin hem grubu ile etkileşerek hızlı bir şekilde nitrit ve nitrata metabolize olur. Kanda nitrat, NO'nun esas stabil biyoreaksiyon ürünüdür. Hemoglobin olmayan doku kültüründe esas stabil biyoreaksiyon ürünü nitrittir. NO ayrıca proteinlerin ve aminoasitlerin thiol (-SH) grupları ile reaksiyona girer ve sonuçta sabit nitrosothioller oluşabilir (2, 3, 5).

                        NO’nun yararlı etkileri NO molekülü pikomolar düzeylerde cNOS ile fizyolojik ve koruyucu etki gösterir. Nitrik oksit, fizyolojik şartlarda mukus salgısını ve epitelial hücrelerde sıvı sekresyonunu arttırarak mikroplara, toksinlere ve safra tuzları gibi irritan maddelere karşı koruyucu etki gösterir. Endotel kaynaklı NO farklı organlarda kan basıncı, kan akımı ve vasküler tonusun fizyolojik olarak düzenlenmesinde rol oynar. NO salınımı farklı reseptör bağımlı (asetilkolin, bradikinin, histamin, adenin nükleotidler ve serotonin) ve bağımsız (serbest yağ asitleri) agonistlerce uyarılabilir. Endotel hücreleri mekanoreseptörler gibi davranır ve dolaşımdaki kan tarafından endotele oluşturulan fiziksel bası kuvvetini biyokimyasal sinyallere dönüştürür (6).

                        NO’nun zararlı etkileri

                        NO nanomolar düzeylerde iNOS üzerinden proinflamatuar ve hasar oluşturucu etkiler gösterir. Oksidatif stres altında NO’nun apoptozisi, sitotoksisiteyi, mutagenezisi ve DNA hasarını arttırıcı etkisi vardır. Ayrıca NO demirsülfür içeren enzimlerin fonksiyonunu değiştirir, mitokondrial solunumu bozucu zararlı etkiler gösterir (6). NO’nun süperoksitle reaksiyonu peroksinitrit üzerinden hidroksil ve nitrojen dioksit radikallerini oluşturur (7). Oluşan peroksinitrit hücrede nükleer bir enzim olan poli(ADP-riboz) sentazı (PARS) aktive eder. PARS enzimi nikotinamid adenin dinükleotidi substrat olarak kullanır. Sonuçta bu olay ATP tüketimine ve hücrenin ölümüne yol açabilir (8).

                        3. Sistemik İnflamatuvar Yanıt Sendromu (Systemic Inflammatory Response Syndrome; SIRS)

                        SIRS, endotoksemi, bakteriyemi, viremi, fungemi, sepsis, septik şok ve çoklu organ yetmezliği gibi birçok patolojinin ortak klinik görüntüsüdür. Sepsis "enfeksiyona sistemik inflamatuar yanıt" olarak tanımlanabilir. Özellikle Gram (-) bakterilerin meydana getirdiği SIRS, sık görülmesi, yüksek ölüm oranı (%30-90) ve kolay deneysel metodlar kurulabilmesi nedeniyle Gram (+)’lere göre daha çok araştırma konusu olmuştur. Birçok inflamatuar mediatörün bu tabloda rolü bilinmekle beraber son yirmi yıl içerisinde deneysel çalışmalar endotelden salınan mediatörler ve özellikle NO üzerinde yoğunlaşmıştır (9). Aslında SIRS çoğu zaman "endotel disfonksiyonu" ile beraber seyretmektedir.

                        4. SIRS için bazı deneysel hayvan modelleri

                        Endotoksin ile SIRS oluşturulması


                        Endotoksin, Gram (-) bakterilerin hücre dış duvarının en önemli komponenti olup temel olarak lipopolisakkarit (LPS) ve çeşitli oranlarda bakteri duvar komponentlerini içerir. LPS’de her serotip için farklı antijenik özellik taşıyan bir oligosakkarid zinciri, benzer bakteriler arasında aynı yapıyı gösteren bir kor oligosakkaridi ve tüm serotipler için aynı özelliğe sahip lipid komponenti, "Lipid A", bulunur. Literatürde LPS ve endotoksin aynı anlamda kullanılsada aralarında fark vardır. LPS saflaştırılmış glikolipid yapıya sahiptir. Endotoksin ise LPS’e ek olarak az miktarda hücre duvarı proteinleri, lipidler, lipoproteinler ve polisakkarit içerir. LPS toksisitesi çoğunlukla içerdiği Lipid A yapıdan kaynaklanır. Sıçanlarda tek doz bolus yüksek endotoksin uygulaması vazodilatasyon, kardiyovasküler kollaps ve erken ölüme neden olur. Düşük doz ise hiperdinamik cevap ve kardiyak debi artışı yapar. Deneysel model sonucunda oluşan tablo "enfeksiyona sistemik inflamatuar yanıt” benzeridir.

                        LPS genelde liyofilize toz halinde ticari olarak temin edilir. Liyofilizasyon işlemi fenol eksraksiyonu, triklorasetikasid ekstraksiyonu, fenolkloroform-eter ekstraksiyonu, jel filtrasyon gibi farklı kimyasal işlemler uygulanarak üretici firmalar tarafından yapılır. E. coli, Salmonella typhimurium, Klebsiella pneumoniae, Pseudomonas aeruginosa gibi birçok Gram (-) bakteriden elde edilmesine rağmen deneysel septik şok çalışmaları E. coli’den elde edilen LPS’ler üzerinde yoğunlaşmıştır. Bu grupta 026:B6, O55:B5, O111:B4 gibi farklı serotiplere sahip farklı suşlardan elde edilmiş LPS türleri mevcuttur. Toz halindeki LPS planlanan deneysel çalışma prokollerine göre suda çözünerek deney hayvanlarına periton veya damar içine tek doz veya infüzyon şeklinde verilir. Literatür incelendiğinde uygulanacak dozun 1 mg/kg ile 80-100 mg/kg aralığıda geniş bir doz aralığına sahip olduğu gözlenebilir (10, 11, 12, 13, 14). Sağkalım (survival) çalışmalarında dozlar genelde yüksektir (15).

                        Sıklıkla SIRS oluşturmak ve inflamasyonu indüklemek için LPS kullanılmıştır. Enfeksiyona bağlı insan SIRS’da ve septik şokta meningokoksemi hariç düşük veya saptamayacak düzeyde LPS bulunmaktadır. Ayrıca insan SIRS olgularının yaklaşık yarısından sorumlu olan gram-pozitif sepsiste, LPS bulunmamaktadır. Verilen tek tip mikroorganizmaya ait LPS, insan septik şok tablosundaki çeşitli türlerdeki canlı bakterilerin yerini tutmamaktadır. Bu nedenle çeşitli mikroorganizmaların gözlendiği çeşitli “çekal bağlama ve delme” modelleri bazı araştırıcılar tarafından deneysel hayvan modeli olarak tercih edilir.

                        Çekal bağlama ve delme (cecal ligation and puncture; CLP) ile SIRS oluşturulması

                        Cerrahi yoğun bakım ünitelerinde gözlenen en sık SIRS nedeni gastrointestinal sistem duvarının bütünlüğünün bozulmasıdır (perfore apandisit, divertikülit, kolon perforasyonu gibi). Bu durumu taklit etmek için bazı deneysel modeller geliştirilmiştir. En çok kullanılan deneysel model CLP’dir. Diğer modellerden farklı olarak çok çeşitli mikroorganizmaların (polimikrobial) gözlendiği enfeksiyona bağlı sistemik inflamasyon tablosu gelişir. Kan ve dokularda artan sayıda bakterinin bulunması, SIRS ve septik şoktaki rastlanan problemleri LPS kullanılan modellerden daha yakın taklit etmektedir. Uygulaması kolay ve ucuzdur. LPS veya dışardan bakteri uygulamasına gerek yoktur.

                        Öncelikle sıçanlarda tarif edilmesine rağmen fare ve koyunlarda da uygulanmıştır. Anestezi altındaki hayvanlarda barsak geçişini bozmaksızın çekumun standart bir iplik ile bağlanması ve daha sonra bağlanan kısmın standart ölçüdeki bir enjektör iğnesi ile bir veya iki kez delinmesi esasına dayanır. Gaita geçişi devam eder. Operasyon sonrasında karın boşluğu kapatılarak hayvanlara ağırlıklarına göre ciltaltına sıvı verilir (resusitasyon). Oluşan sistemik inflamasyon tablosu hayvan türüne, hayvanın aç veya tok olmasına, delme amacıyla kullanılan iğnenin çapına, delme sayısına, farklı seviyelerde çekum bağlanmasına, barsak geçişinin durmasına , resusitasyon amacıyla sıvı veriliş şekline göre değişebilir (16).

                        Zymosan ile oluşturulan çoklu organ yetmezliği ve SIRS

                        Zymosan Saccharomyces cerevisiae mantarının hücre duvarından elde edilir. Yapı olarak %73 polisakkarit, %15 protein, %7 lipid ve çeşitli inorganik yapılar ihtiva eder. Deney hayvanlarına verilmesini takiben birçok inflamatuar mediatörün açığa çıkışına ve uzamış inflamasyon yanıtına neden olur. LPS verilerek veya CLP ile oluşturulan modellerin aksine zymosan daha uzun dönemli, üç fazlı inflamasyon tablosu ortaya çıkarır. Kronik çalışmalar için uygun bir modeldir. 0.8-1.0 mg/g (vücut ağırlığı) dozda uygulandığında birinci fazda akut peritonit ve ölümler, ikinci fazda nisbi düzelme, üçüncü fazda ise yaygın sistemik inflamasyonu takiben çoklu organ yetmezliği ve beraberinde ölümler gözlenir. Enfeksiyonun ön planda olmadığı kronik, yaygın sistemik inflamatuvar yanıtın incelenebileceği deneysel bir modeldir (17).

                        5. Deneysel SIRS hayvan modellerinde, NO ile ilişkili bazı bulgular

                        SIRS deneysel modellerinde mezenterik iskemi gözlenir


                        Zymosan ve düşük dozlarda endotoksin ile oluşturulan deneysel hayvan modellerinde, mezenterik damar yatağında iskemi oluşmakta ve damarsal rezistans artmaktadır. Bu durum yaygın vazodilatasyona bağlı hipotansiyon ile karakaterize septik şok tablosu ile çelişmektedir. Mezenterik damar yatağında rezistans artışının L-arjinin-nitrik oksit yolağı ile ilişkisi tartışmalıdır. L-NAME gibi non-selektif NOS inhibitörleri, Lcanavanine gibi selektif iNOS inhibitörleri hasarı etkilemezken, diğer selektif iNOS inhibitörü aminoguanidin bu artışı önlemektedir. Ayrıca endotelin reseptör antagonisti bosentan da rezistans artışını önlemektedir (10, 18).

                        İleri evre SIRS’da vazokonstriktörlere karşı vasküler cevapsızlık ve hipotansiyon oluşur

                        Enfeksiyona bağlı SIRS’ın ileri safhalarında septik şok tablosu ortaya çıkar ve hipotansiyon ile karakterize progresif dolaşım yetmezliği gelişir. Bu olayın devamında oluşan tablo terminal septik şok olarak adlandırılır ve sistolik kan basıncının 90 mmHg’dan az olduğu, hastaların sıvı ve vazoaktif ilaçlarla tedaviye yanıt vermedikleri durum olarak kabul edilir (katekolaminlere vasküler hiporeaktivite). Düşük doz LPS sonrası iNOS aktivitesinin aminoguanidin ile blokajı in vivo şartlarda vasküler cevapsızlık ve hipotansiyonun oluşumunu önler (12).

                        SIRS’da barsak duvarından bakteriyel translokasyon gözlenir

                        Deneysel hayvan modellerinde, düşük dozlarda endotoksin veya zymosan uygulanması sonrasında, barsak duvarından bakteriyel translokasyon gözlenir. Barsak dokusunun fizyolojik bariyer fonksiyonunun barsak lümenin içeriği ile doku kan akımına bağımlı olduğu bilinmektedir. SIRS’da gözlenen ölçüde şiddetli mezenterik rezistans artışına bağlı barsak iskemisinin barsak duvarının bütünlüğünü bozması ve lümende bulunan fırsatçı mikroorganizmalann dolaşıma geçmesi mümkündür (19). Bu hipotezin doğru olduğu deneysel olarak çok düşük dozda endotoksin verilmesi sonucu mezenterik lenf nodları dalak, karaciğer ve sistemik dolaşımda canlı koloni oluşturabilir bakterilerin bulunduğunun gösterilmesi ile kanıtlanmıştır. Benzer şekilde bu durum iNOS blokörü aminoguanidin ön tedavisi ile engellenebilir (20).

                        Düşük doz endotoksin ile oluşturulan SIRS’da, endotoksin ön-tedavisi, daha sonraki yüksek dozun yapacağı hasarı arttırır

                        Düşük doz endotoksin ön tedavisi ile endotoksinin bazı etkilerine karşı "tolerant" hale getirilmiş farelerin, aradan bir kaç gün geçtikten sonra uygulananan yüksek doz endotoksinin etkilerine daha dayanıklı hale gelmeleri beklenebilir. Düşük doz endotoksin ön tedavisi görmüş farelere dört gün sonra yüksek doz endotoksin uygulandığında mezenterik kan akımlan kontrol grubuna oranla daha da düşük seviyeye inmiştir. Endotoksinin normalde oluşturduğu barsak iskemisi daha da şiddetlenmiştir. Bu sonuçlar, düşük doz endotoksin ön-tedavisinin daha sonraki inflamasyon yanıtı için koruyucu olmadığını göstermektedir (11, 19).

                        SIRS’da çeşitli orgnlarda histopatolojik hasar oluşur

                        Zymosan, düşük dozlarda endotoksin veya CLP ile oluşturulan deneysel SIRS modellerinde morfolojik olarak dokularda hasar oluşmaktadır (10,18,21). Böbrek, akciğer, karaciğer, dalak gibi organlarda gözlenen hasarı genelde parankim harabiyeti, hemokonjesyon, inflamatuvar lenfositik infiltrasyon ile karakterize olan ağırlık artışı oluşturmaktadır. Ayrıca karaciğere özgü "spotty nekroz" ve dalağa özgü "kapsül içine kanama" da gözlenebilir. Tüm bu patolojik değişikliklerin Larjinin-nitrik oksit yolağı ile ilişkisi tartışmalıdır. L-NAME gibi non-selektif NOS inhibitörleri, L-canavanine gibi selektif iNOS inhibitörü hasarı etkilemezken, diğer selektif iNOS inhibitörü aminoguanidin organ hasarını önlemektedir. Ayrıca endotelin reseptör antagonisti bosentan varlığında da organ hasarı tamamen ortadan kalkmaktadır.

                        İleri safha SIRS yüksek mortalite ile seyreder

                        SIRS’ın ileri safhalarında gelişecek olan septik şok %30-90 gibi yüksek mortalite oranı ile seyreder (9). SIRS ve septik şokta sağkalım (survival) çalışmalarında NO blokajı erken dönemde yaşam oranını artırırken, uzun dönemde faydasız bulunmuştur (15). Özellikle deneysel septik şok modellerinde erken hiperdinamik fazda NOS blokajı, geç hipodinamik fazda endotelin reseptör blokajı yeni bir tedavi yaklaşımı olarak tanımlanmıştır (15,22,23) Literatürde SIRS ve septik şok konularında NO ile ilişkili yapılan deneysel çalışmaların sonuçları arasında farklılıklar mevcuttur. Bunun nedeni kullanılan hayvanlar (tür farkı) ve modeller, NOS inhibitörlerinin dozu ve tipi, özellikle NOS inhibitörlerinin uygulama zamanları arasındaki farklılıklarla açıklanabilir. Sistemik inflamasyon ve septik şokta NO’nun rolü hakkında çalışmalar devam etmektedir

                        Teşekkür

                        Bu metinde özetlenen “Sistemik İnflamatuvar Yanıt Sendromu-septik şok” ile ilgili bulguların büyük bölümü, kendi laboratuvarlarımızda 1995 yılından bu yana devam eden deneysel çalışmaların sonuçlarına dayanmaktadır. Halen bu konulardaki çalışmalarımızın beraber devam ettiği Prof. Dr. M. Oğuz Güç, Dr. Nadir Ulu’ya ve diğer emeği geçen eski çalışma arkadaşlarıma teşekkür ederim. Doç. Dr. Alper B. İskit, Türkiye Bilimler Akademisi Genç Bilim İnsanlarını Ödüllendirme Programı (TUBA-GEBİP) tarafından desteklenmektedir (EA-TUBA-GEBIP/2001-2- 11).

                        KAYNAKLAR 1. Coleman, J.W., 2001. Nitric oxide in immunity and inflammation. Int. Immunopharmacol. 1(8), 1397- 1406. 2. Moncada, S., Palmer, R.M.J., Higgs, E.A., 1991. Nitric oxide: physiology, pathophysiology and pharmacology. Pharmacol. Rev. 43, 109-143. 3. Schulz, R., Nava, E., Moncada, S.,1992. Induction and potential biological relevance of a Ca2+ independent nitric oxide synthase in the myocardium. Br. J. Pharmacol. 105, 575-580. 4. Iskit, A.B., Guc, M.O, Ilhan, M., 1997. Lcanavanine and dexamethasone attenuate endotoxin-induced suppression of ischaemiareperfusion arrhythmias. Eur. J. Pharmacol. 326, 183-190. 5. Lipton, S. A., Choi, Y-B., Pan, Z-H., Lei, S. Z., Chen, H-S. V., Sucher, N. J., Loscalzo, J., Singel, D. J., Stamler, J. S., 1993. A redox-based mechanism for the neuroprotective and neurodestructive effects of nitric oxide and related nitroso-compounds. Nature 364, 626-632. 6. Gross, S.S., Wolin, M.S., 1995. Nitric oxide: Pathophysiological mechanisms. Annu. Rev. Physiol. 57, 737-769. 7. Beckman, J.S., Beckman, T.W., Chen, J., Marshall, P.A., Freeman, B.A., 1990. Apparent hydroxyl radical production by peroxynitrite: Implications for endothelial injury from nitric oxide and superoxide. Proc. Natl. Acad. Sci. USA 87,1620-1624. 8. Szabo, C.,1998. Role of poly (ADP-ribose) synthase in inflammation. Eur. J. Pharmacol. 350,1-19. 9. Rangel-Frausto, M.S., Pittet, D., Costigan, M., Hwang, T., Davis, C., Wenzel, R.P., 1995. The natural history of the systemic inflammatory response syndrome (SIRS). J. Am. Med. Assoc. 273, 117-123. 10. Iskit, A.B., Sungur, A., Gedikoglu, G., Guc, M.O., 1999. The effects of bosentan, aminoguanidine and L-canavanine on mesenteric blood flow, spleen and liver in endotoxaemic mice. Eur. J. Pharmacol. 379, 73-80. 11. Baykal, A., Iskit, A.B., Kaynaroglu, V., Guc, M.O., Sayek, I., Sanac, Y., 1999. Effects of adrenaline or endotoxin tolerance states on mesenteric blood flow in endotoxaemia. Aus. N.Z.J. Surg 69, 134-137. 12. Kavuklu, B., Iskit, A.B., Guc, M.O., Ilhan, M., Sayek, I., 2000. Aminoguanidine attenuates endotoxin-induced mesenteric vascular hyporeactivity. Br. J. Surg. 87, 448-453. 13. Baykal, A., Kavuklu, B., Iskit, A.B., Guc, M.O., Hascelik, G., Sayek, I., 2000. An experimental study of the effect of nitric oxide inhibition on mesenteric blood flow and interleukin-10 levels in lipopolysaccharide. World. J. Surg. 24(9), 1116- 1120. 14. Baykal, A., Iskit, A.B., Hamaloglu, E., Guc, M.O., Hascelik, G., Sayek, I., 2000. Melatonin modulates mesenteric blood flow and TNF alfa concentrations after lipopolysaccharide challenge. Eur. J. Surg. 166, 722-727. 15. Iskit, A.B., Guc, M.O., 2001. The timing of endothelin and nitric oxide inhibition affects survival in a mice model of septic shock. Eur. J. Pharmacol. 414, 281-287. 16. Baker, C.C., Chaudry, I.H., Gaines, H.O., et al., 1983. Evaluation of factors affecting mortality rate after sepsis in a murine cecal ligation and puncture model. Surgery 94(2), 331-335. 17. Volman, T.J., Hendriks, T., Goris, R.J., 2005. Zymosan-induced generalized inflammation: experimental studies into mechanisms leading to multiple organ dysfunction syndrome. Shock 23(4), 291-297. 18. Tanriverdi, P., Yuksel, B.C., Rasa, K., Guler, G., Iskit, A.B., Guc, M.O., Korkmaz, A., 2005. The effects of selective nitric oxide synthase blockers on mesenteric blood flow, organ injury and survival induced by zymosan. J. Surg. Res. 124(1), 67-73. 19. Baykal, A., Iskit, A.B., Kaynaroglu, V., Guc, M.O., Hascelik, G., Sayek, I., Sanac, Y., 2000. Adrenaline tolerance does not prevent bacterial translocation in a murine burn model. Int. J. Surg. 85(1), 18-22. 20. Kavuklu, B., Agalar, C., Guc, M.O., Sayek, I., 1998. Evidence that aminoguanidine inhibits endotoxin-induced bacterial translocation. Br. J. Surg. 85(8),1103-1106. 21. Iskit, A.B., Senel, I., Sokmensuer, C., Guc, M.O., 2004. Endothelin receptor antagonist bosentan improves survival in a murine caecal ligation and puncture model of septic shock. Eur. J. Pharmacol. 506, 83-88. 22. Iskit, A.B., Guc, O., 2003. Effects of endothelin and nitric oxide on organ injury, mesenteric ischemia, and survival in experimental models of septic shock. Acta. Pharmacol. Sin. 24(10), 953- 957. 23. Iskit, A.B., Guc, M.O., 2004. A new therapeutic approach for the treatment of sepsis. Med. Hypotheses 62(3), 342-345.
                        Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                        Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                        Yorum yap


                        • #42
                          Nitrik oksit sentaz ve nitrik oksit ölçüm yöntemlerine giriş
                          Doç. Dr. Bahar TUNÇTAN
                          Mersin Üniversitesi, Eczacılık Fakültesi, Farmakoloji Ab.D., Mersin


                          Giriş

                          Nitrik oksit (NO), hayvanlar ve insanlarda önemli etkileri olan atmosferik bir gaz ve serbest radikaldir. Memeli hücrelerinin endotel kökenli gevşetici bir faktör (endotheliumderived relaxing factor, EDRF) sentezlemeleri ilk kez 1980’de gösterilmiştir11. 1987’de, EDRF ve NO’nun benzer etkiler oluşturması nedeni ile bu iki maddenin aynı olduğu ya da EDRF’nin yapısında bir NO grubu olabileceği ileri sürülmüştür17,30. Daha sonraları yapılan çalışmalarda, bu inorganik gazın fizyolojik bir haberci olarak sinir, immün, gastrointestinal ve kardiyovasküler sistemlerde önemli bir düzenleyici molekül olduğu gösterilmiştir. Normal fonksiyonlara aracılık etmesinin yanısıra septik şok, hipertansiyon, felç ve nörodejeneratif hastalıklar gibi patofizyolojik durumlarda rolü olduğunun gösterilmesi ile NO’nun önemi daha da artmıştır. 1987’den günümüze kadar hayvan ve insanlarda NO ile ilgili olarak yapılan çalışmaların sayısı 70.000'e yaklaştığından, biyolojik çalışmalarda NO sentaz (NOS) enzim mRNA/protein ekspresyonu ve/ veya aktivitesi ile NO'nun etkilerinin belirlenmesi ile ilgili olarak hızlı ve basit ölçüm yöntemlerinin geliştirilmesine ve halen kullanılan yönemlerin iyileştirilmesine gerek duyulmaktadır.

                          NOS ve NO ölçümünde kullanılan yöntemler

                          Günümüzde NOS enzimlerinin yerleşiminin gösterilmesi için kullanılan yöntemler arasında immünohistokimyasal ve in situ hibridizasyon yöntemleri bulunmaktadır 6,43. NOS enzimlerinin mRNA ekspresyonu için kullanılan yöntemler arasında ise ters transkripsiyon polimeraz zincir reaksiyonu, Northern-blot ve ribonükleaz-koruma analizi gibi yöntemler kullanılmaktadır 25,35. NOS enzimlerinin protein ekpsresyonu için de en sık kullanılan yöntem Western-blot analizidir40. Diğer yandan, biyolojik sistemlerde NO konsantrasyonlarının ölçümü, NO’nun in vivo olarak düşük miktarlarda oluşması ve oluştuktan sonra hızla moleküler oksijen ile etkileşerek reaksiyona girmesi ölçümünü güçleştirmektedir. NO'nun yarılanma ömrünün çok kısa olması da (kan gibi fizyolojik ortamlarda yarılanma ömrü 6-20 saniye kadar) bazal koşullarda NO ölçümünü güçleştirmektedir9,28. Son yıllarda NOS ve NO ölçümünün doğrudan, güvenilir, hızlı ve kolay bir şekilde yapılabilmesine olanak tanıyan yöntemler geliştirilmeye çalışılmaktadır.

                          NOS aktivitesi ölçümü için kullanılan doğrudan olmayan yöntemler

                          Biyolojik örneklerde guanilil siklaz20 ve NOS aktivitesinin ölçümü46, damar ve/veya damar dışı düz kas preparatlarının kullanıldığı biyoanaliz11,45, trombosit agregasyonunun inhibisyonu18,45 ve L-arjinin34, siklik guanozin monofosfat (siklik GMP)17,22, L-sitrülin16,19,41, biyopterin15 ve nitrit/nitrat gibi NO metabolizmasının dayanıklı son ürünlerinin ölçülmesi1,9,10,12, 28,41,42,44 NO’nun varlığı ile ilgili olarak bilgi vermektedir. Ayrıca, NO donörleri3,45, NOS inhibitörleri3,36 ve guanozin trifosfat (GTP) siklohidrolaz I inhibitörleri14 gibi NO oluşumu üzerinde etkili madelerin kullanılması NO oluşumu hakkında bir tahmin sağlamaktadır. Bu yöntemlerden hepsinin spesifiklikleri farklıdır ve NO oluşumu ile ilgili olarak doğrudan olmayan bilgiler sağlamaktadır. Sadece sGMP veya sitrülin konsantrasyonlarının ölçümü, NO miktarları ile ilgili olarak kantitatif bir bilgi sağlayabilir8,19,22. NO ölçümü için kullanılan bu yöntemlerin özellikle L-arjinin analogları kullanıldığında yanlış bilgiler elde edilebileceği de bildirilmiştir2,5,13,31.

                          NOS aktivitesi ölçümü için kullanılan doğrudan yöntemler

                          NO’nun doğrudan olarak gerçeğe yakın konsantrasyonlarının ölçümüne olanak sağlayan yöntemler bulunmaktadır. NO ölçümü için sıklıkla kullanılan aletli yöntemler spektroskopik ve elektroanalitik yöntemlerdir. Bu yöntemlerden bazıları Tablo 1’de verilmiştir. Bu yöntemlerden başka florometrik28,42, gaz kromatografisi1,10, gaz kromatografisi-kütle spektroskopisi1,10, yüksek basınçlı sıvı kromatografisi8, 10,33,41,47 ve kapiler elektroforez10 gibi yöntemler de kullanılmaktadır.
                          Yöntem Prensip Örnek hacmi (ml) Ölçüm sınırları (M) Avantaj Dezavantaj
                          Kemilüminesans 1,10,24,26,28,32,33,41 NO’nun ozon ile etkileşmesi sonucunda açığa çıkan ışığın spektroskopik ölçümü 2.0 2x10⁻⁸-2x10⁻⁷ Doğrudan ve yüksek duyarlılık ile ölçüm; gerek sulu gerekse gaz halindeki örneklerde analiz kolaylığı; klinikte NO inhalasyonu sırasında NO ve nitrit düzeylerinin izlenebilmesi Biyolojik ortamdan NO ayırmanın güçlüğü; ortamda ozon ile etkileşebilen maddelerin (amonyum, olefin, sülfür gazları gibi) bulunması; NO’ nun kullanılan materyale yapışması
                          Elektron paramanyetik rezonans1,4,29,32 NO’nun nitronlar veya nitrozo bileşikleri gibi nitroksitler veya hemoglobin ile etkileşme sırasında oluşan enerji miktarı ve manyetik alan şiddetinin spektroskopik ölçümü 0.25 4x10⁻⁶-5x10⁻⁵ Sulu ortam, hücreler ve dokularda basit ve yüksek duyarlılıkla ölçüm yapılabilmesi Donanımın oldukça özel ve pahalı olması; ortamın pH’sına bağlı olarak NO-hemoglobin etkileşmesi ve sonuçların doğru alınamaması
                          Methemoglobin spektrofotometris i 1,6,28,32,37,41 İndirgenmiş hemoglobinin (Fe2+) NO tarafından methemoglobine (Fe3+) oksidasyonu sırasında oluşan NO3 - ’ün verdiği absorbansın spektroskopik ölçümü 1.0 2x10⁻⁹-1x10⁻⁶ Kolaylıkla ve kısa sürede ölçüm yapıla-bilmesi Ortamda bulunan nitrozil gruplarının da ölçülmesi
                          Elektrokimyasal yöntemler1,10,32,41 Spesifik elektrotlar üzerinde NO oksidasyonu sırasında oluşan akımın ölçülmesi Biyolojik örneklerdeki NO’nun in situ olarak ölçülebilmesi
                          Clark elektrodu1,10,21,39,41 Platin (anot) ve gümüş (katot) elektrotlardan oluşan modifiye oksijen elektrodu üzerinde sabit bir akım uygulandıktan sonra NO’nun anot üzerinde oksidasyonu ve bu sırada oluşan değişikliğin amperometrik ölçümü 0.1 1x10⁻⁶-3x10⁻⁴ Kullanılan elektrodun NO’ya spesifik olması; yüksek mik-tarların ölçülebilmesi; dokularda lokal olarak oluşan NO’nun ölçülebilmesi; kısa zamanda yanıt alınabilmesi Elektrotları ayıran yarıgeçirgen membrandan geçebilen oksijen ile reaksiyona girerek nitrit oluşumu ile duyarlılığın azalabilmesi
                          Porfirinik mikroelektrot1,10,38,41 NO oksidasyonunun polimerik metalloporfirin (ntipi yarı iletken) üzerinde olması ve oluşan akımın amperometrik olarak ölçülmesi 1x10⁻⁹ 1x10⁻⁸-3x10⁻³ Kullanılan elektrodun NO’ya spesifik olması; yüksek miktarların ölçülebilmesi; alıcının küçük olması ve hızlı yanıt verebilmesi; NO salıverilme kinetiğinin çalışılabilmesi; endotel ve düz kas hücre kültürlerinde NO’nun ölçülebilmesi Ortamda bulunan katekolaminlerin de ölçülmesi
                          Kaynaklar

                          1. Archer S. Measurement of nitric oxide in biological models. FASEB J. 7, 349-360, 1993. 2. Archer SL, Hampl V. NG-monomethyl-L-arginine causes nitric oxide synthesis in isolated arterial rings: trouble in paradise. Biochem. Biophys. Res. Commun. 188(2), 590-596, 1992. 3. Assreuy J, Cunha FQ, Liew FY, Moncada S. Feedback inhibition of nitric oxide synthase activity by nitric oxide. Br. J. Pharmacol. 108, 833-837, 1993. 4. Bachmann S, Mundel P. Nitric oxides in the kidney: synthesis, localization and function. Am. J. Kidney Dis. 24(1), 112-129, 1994. 5. Bogle RG, Moncada S, Pearson CD, Mann GE. Identification of inhibitors of nitric oxide synthase that do not interact with the endothelial cell Larginine transporter. Br. J. Pharmacol. 105, 768- 770, 1992. 6. Cattel V, Mosley K. Immunohistochemical localization of NOS isoforms. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 181-189, 1998. 7. Cattell V, Cook T, Moncada S. Glomeruli synthesize nitrite in experimental nephrotoxic nephritis. Kidney Int. 38, 1056-1060, 1990. 8. Cunningham JM, Rayne RC. Radiochemical measurement of NOS activity by conversion of [14C]L-arginine to citrulline using HPLC separation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 75-81, 1998. 9. Dejam A, Hunter C, Schechter AN, Gladwin MT. Emerging role of nitrie in human biology. Blood Cells, Molecules, and Diseases 32, 423-429, 2004. 10. Ellis G, Adatia I, Yazdanpanah M, Makela SK. Nitrite and nitrate analyses: A clinical Biochemistry perspective. Clin. Biochem. 31, 195-220, 1998. 11. Furchgott RF, Zawadzki JV. The obligatory role of endothelial cells in the relaxation of arterial smooth muscle by acetylcholine. Nature 288, 373-376, 1980. 12. Green LC, Wagner DA, Glogowski J, Skipper PL, Wishnok JS, Tannenbaum SR. Analysis of nitrate, nitrite, and [ 15N]nitrate in biological fluids. Anal. Biochem. 126, 131-138, 1982. 13. Greenberg SS, Xie J, Spitzer JJ ve ark. Nitro containing L-arginine analogs interfere with assays for nitrate and nitrite. Life Sci. 57, 1949-1961, 1995. 14. Hatakeyama K, Yoneyama T. A sensitive assay for the enzymatic activity of GTP cyclohydrolase I. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 265-272, 1998. 15. Hatakeyama K. Measurement of biopterin and the use of inhibitors of biopterin biosynthesis. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 251-264, 1998. 16. Hecker M, Mitchell JA, Harris HJ, Katsura M, Thiemermann C, Vane JR. Endothelial cells metabolize NG-monomethyl-L-arginine to L-citrulline and subsequently to L-arginine. Biochem. Biophys. Res. Commun., 167, 1037-1043, 1990. 17. Ignarro LJ, Buga GM, Wood KS, Byrns RE, Chaudhuri G. Endothelium-derived relaxing factor produced and released from artery and vein is nitric oxide. Proc. Natl. Acad. Sci. U.S.A. 84, 9265-9269, 1987. 18. Kita Y, Hirasawa Y, Maeda K, Nishio M, Yoshida K. Spontaneous nitric oxide release accounts for the potent pharmacological actions of FK409. Eur. J. Pharmacol. 257, 123-130, 1994. 19. Knowles RG, Salter M. Measurement of NOS activity by conversion of radiolabeled arginine to citrulline using ion-exchange separation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 67-73, 1998. 20. Kondo K, Mitchell JA, de Nucci G, Vane JR. Simultaneous measurement of endothelium-derived relaxing factor by bioassay and guanylate cyclase stimulation. Br. J. Pharmacol. 98, 630-636, 1989. 21. Kröncke K-D, Kolb-Bachofen V, Berschick B, Burkart V, Kolb H. Activated macrophages kill pancreatic syngeneic islet cells via argininedependent nitric oxide generation. Biochem. Biophys. Res. Commun. 175(3), 752-758, 1991. 22. Laychock SG. Determination of NOS activity using cyclic-GMP formation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 93-100, 1998. 23. Laychock SG. Determination of NOS activity using cyclic-GMP formation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 93-100, 1998. 24. Majid DSA, Williams A, Navar LG. Inhibition of nitric oxide synthesis attenuates pressure-induced natriuretic responses in anaesthetized dogs. Am. J. Physiol. 264, F79-F87, 1993. 25. Martin-Sanz, Bosca L. Measurement of NOS mRNA by Northern blotting and the ribonuclease-protection assay. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 163-170, 1998. 26. Michelakis ED, Archer SL. The measurement of NO in biological systems using chemiluminesence. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 111-127, 1998. 27. Muller CD, Schuber F. Fluorometric determination of polystyrene latex: application to the measurement of phagosomes and phagocytosis. Anal. Biochem. 152, 167-171, 1986. 28. Nagano T. Practical ethods for detection of nitric oxide. Luminescence 14, 283-290, 1999. 29. Ohnishi ST. Measurement of NO using electron paramagnetic resonance. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 129-153, 1998. 30. Palmer RMJ, Ferrige AG, Moncada S. Nitric oxide release accounts for the biological activity of endothelium-derived releasing factor. Nature 327, 524-526, 1987. 31. Peterson DA, Peterson DC, Archer S, Weir EK. The nonspecifity of specific nitric oxide syntheses inhibitors. 187, 797-801, 1992. 32. Radomski MW, Palmer RM, Moncada S. Endogenous nitric oxide inhibits human platelet adhesion to vascular endothelium. Lancet ii, 1057- 1058, 1987. 33. Rassaf T, Feelisch M, Kelm M. Circulating NO pool: Assessment of nitrite and nitroso species in blood and tissues. Free Radic. Biol. Med. 36, 413-422, 2004. 34. Reckelhoff JF, Kellum JA, Blanchard EJ, Bacon EE, Wesley AJ, Kruckeberg WC. Changes in nitric oxide precursor, L-arginine, and metabolites, nitrate and nitrite, with aging. Life Sci. 55(24), 1895-1902, 1994. 35. Reiling N, Ulmer AJ, Hauschildt S. measurement of eNOS and iNOS mRNA expression using reverse transcription polymerase chain reaction. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 155-161, 1998. 36. Russell RJ. Use of arginine analogs as inhibitors of nitric oxide synthase in rat aortic rings. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 243-250, 1998. 37. Salter M, Knowles RG. Assay of NOS activity by the measurement of conversion of oxyhemoglobin to methemoglobin by NO. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 61-65, 1998. 38. Schmidt HHHW, Warner TD, Ishii K, Sheng H, Murad F. Insulin secretion from pancreatic β cells caused by L-arginine-derived nitrogen oxides. Science 255, 721-723, 1992. 39. Schmidt K, Mayer B. Determination of NO with a Clark-type electrode. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 101-109, 1998. 40. Smith FS, Titheradge MA. Detection of NOS isoforms by Western-blo analysis. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 171-180, 1998. 41. Tarpey MM, Fridovich I. Methods of detection of vascular reactive species. Nitric oxide, superoxide, hydrogen peroxide, and peroxynitrite. Circ. Res. 89, 224-236, 2001. 42. Tarpey MM, Wink DA, Grisham MB. Methods for detection of reactive metabolites of oxygen and nitrogen: In vitro and in vivo considerations. Am. J. Physiol. Regul. Integr. Comp. Physiol. 286, R431- R444, 2004. 43. Taylor GM, Cook HT. A practical protocol for the demonstration of NOS using in situ hybridization. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 191-204, 1998. 44. Titheradge MA. The enzymatic measurement of nitrate and nitrite. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 83-91, 1998. 45. Tullett JM, Rees DD. Use of NO donors in biological systems. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 205-214, 1998. 46. Weinberg JB, Misukonis MA, Shami PJ, Mason SN, Sauls DL, Dittman WA, Wood ER, Smith GK, McDonald B, Bachus KE, Haney AF, Granger DL. Human mononuclear phagocyte inducible nitric oxide synthase (iNOS): analysis of iNOS mRNA, iNOS protein, biopterin, and nitric oxide production by blood monocytes and peritoneal macrophages. Blood 86(3), 1184-1195, 1995. 47. Wennmalm A, Benthin G, Edlund A, Jungersten L, Kieler-Jensen N, Lundin S, Westfelt UN, Peterson A-S, Waagstein F. Metabolism and excretion of nitric oxide in humans. An experimental and clinical study. Circ. Res. 73, 1121-1127, 1993.
                          Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                          Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                          Yorum yap


                          • #43
                            Nitrik oksit sentaz yerleşimlerinin immünohistokimyasal yöntemler ile gösterilmesi
                            Prof. Dr. Hakan GÜRDAL*, Prof. Dr. Alp CAN**
                            Ankara Üniversitesi, Tıp Fakültesi, *Farmakoloji ve Klinik Farmakoloji, **Histoloji ve Embriyoloji Ab.D., Ankara


                            eNOS, iNOS ve nNOS olmak üzere her üç izoform immunohistokimyasal ve immunositokimyasal yöntemlerle görüntülenebilmektedir.

                            Örneklerin hazırlanması (fiksasyon ve kesit hazırlanması (sectioning))

                            İmmunohistokimyasal yöntemlerde öncelikle uygun bir fiksasyon ve kesitin (section) elde edilmesi gerekmektedir. Hücre için bu kolay olabilir fakat hücreler öncelikle cam bir lamel üzerine oturtulmalı ve fiksasyon yapılmalıdır. Dokularda ise dokular elde edilirken fizyolojik bir tamponu takiben fiksayonda kullanılacak solusyonla (%3.5 parformaldehit (PFA)) perfuze edilebilir. Dokular çıkarıldıktan sonra fiksasyona (% 3.5 PFA, 4 saat) devam edilir. Tablo 1 de örnek fiksatifler ve kesit alma teknikleri verilmiştir. Kriyokesitlerin (frozen) alınımı durumunda örnekler kriyoprotektan özelliği olan 1.2M sukroz ve %0.5 PFA içeren solusyon içine alınabilirler. Daha sonra çeşitli kalınlıkta (8 µM) kriyokesitlerin alınımı mümkündür.
                            Fiksatif Frozen Parafin
                            nNOS YOK + +
                            nNOS PFA, Aseton, PLP + +
                            eNOS YOK + +
                            eNOS PFA, Aseton, Etanol + +
                            iNOS YOK + +
                            iNOS PFA,Aseton, PLP, Formalin + +
                            PLP; periodat-lisin-paraformaldehit.

                            İmmunişaretleme (immunostaining, immunolabeling)

                            Örnekler öncelikle uygun bir serum ve protein içeren solusyon ile inkube edilir ve yıkanırlar (Bloke etme, Blocking). Bu aşama NOS proteinleri için kullanılacak antikorların nonspesifik bağlanmalarını engellemeyi amaçlamaktadır. Hücre içi proteinlerin saptanması için hücrelerin permeabilize olması gerekmektedir. Kullanılan fiksasyon solusyonları ve TritonX-100, Tween-20 veya saponin gibi maddeler bunu sağlamaktadır. Örnek solusyon PBS içinde, %2 albumin (BSA), %2 toz süt, %2 normal keçi serumu (eşek, tavşan Biz çalışmalarımızda konfokal mikroskopi kullanıyoruz (Zeiss LSM-510). Fakat fluresan mikroskopisi ile preparatlar değerlendirilebilir. serumuda olabilir, kullanılacak primer ve sekonder antikorlara ve ön deneylere göre belirlenmelidir), 0.1 M glisin, % 0.01 Triton X100. Bu solusyon ile inkübasyon süresi ön deneylerle belirlenmelidir (örneğin 12-16 saat 4º C). Bu işlemden sonra preparatlar PBS ile 1-3 kez yıkanabilir ve primer antikorlar ile işaretlenmeye geçilebilir. Preparatlar uygun bir fizyolojik tamponun (PBS) içinde uygun dilusyonlar ile hazırlanmış primer antikor ile inkübe edilmelidirler. Primer antikorun dilusyonu oldukça önemlidir ve mutlaka farklı dilusyonlar ile ön deneyler yapılmalıdır (1:100-1000). 1:50, 1:100 gibi dilüsyonlarda nonspesifik işaretleme olasılıkları yüksektir. Bu tür işaretlemelerde antikorları spesifik olarak bloke eden peptidler ile işaretleme kontrol edilebilir. Primer antikor ile preparatlar 1-2 saat oda sıcaklığında veya 12-16 saat 4º C'de bekletilebilir. İnkübasyon sonrası preparatlar PBS ile 2-3 kez yıkanır. Bu işlemden sonra bir prob (florasan, enzim, metal) ile işaretli primer antikora karşı geliştirilmiş sekonder antikor ile inkübasyona geçilir. Örneğin primer antikoru tavşan da geliştirilmiş bir NOS antikoru kullanıldığında Cy3 goat anti-rabbit IgG (1:100-500) antikoru ile 2 saat 37º C'de preparatlar bekletilebilir. Sekonder antikorun dilusyonuda kontrol edilmelidir. Bu antikorda nonspesifik bağlanmalara neden olabilir.
                            Eksitasyon (nm) Emisyon (nm)
                            Cy3 575 605
                            Cy5 640 705
                            FITC 490 525
                            Rhodamine 540-560 580
                            Teksas Kırmızısı 590 615
                            Fluorescein 492 520

                            Bu işlemden sonra preparatlar mikroskopi ile incelemeye hazırdır. Eğer bir iki gün beklenilecek ise peparatlar 25 mg/ml sodyum azid içeren glycerol/PBS (1:1) solusyonunda bekletilebilir. Topografik oriyantasyon açısından hücre çekirdekleri Hoechst 33258 gibi boyalarla boyanabilir.

                            Eğer sekonder antikor bir enzim ile işaretlenmişse ışık mikroskopisi, bir metal ile (altın) işaretlenmiş ise electron mikroskopisi kullanmak mümkündür.

                            Kaynaklar
                            1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed.Michael A. Titherradge Human Press Inc. Totowa NJ. 2. Gürdal, H, et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. Pharmacol (basımda).
                            Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                            Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                            Yorum yap


                            • #44
                              Nitrik oksit sentaz mRNA ekspresyonunun ters transkriptaz polimeraz zincir reaksiyonu yöntemi ile belirlenmesi
                              Prof. Dr. Hakan GÜRDAL
                              Ankara Üniversitesi, Tıp Fakültesi, *Farmakoloji ve Klinik Farmakoloji Ab.D., Ankara


                              eNOS, iNOS ve nNOS bazı durumlarda dokularda düşük düzeyde bulunmaları nedeniyle saptanamazlar. RT-PCR ile çok düşük düzeylerdeki NOS mRNA’ları saptanabilir. Bu teknik için öncelikle doku ve hücrelerden total RNA veya polyA+ -mRNA izolasyonu gerekmektedir.

                              RNA izolasyonu

                              Burada oldukça klasik olan RNA izolasyon yöntemi anlatılmayacaktır. Bazı genel özelliklerden bahsedilecektir. RNA izolasyonu için genellikle başlıca iki ana yöntem kullanılmaktadır. Bunlardan birisi bilinen klasik Chomcynski ve Sacchi tarafından tanımlanan yöntemdir. Diğeri ise doku ve hücrelerden elde edilen homojenatlardaki RNA’ların RNA bağlama kapasitesi olan çeşitli kolon materyallerine bağlanması ve bu kolonlardan RNA ların toplanması yöntemidir. Bu yöntemler sırasında dikkat edilecek hususlar RNA yıkılımını azaltıcı (RNAse inhibisyonu) ve DNA kontaminasyonunu azaltıcı tedbirlerin alınmasıdır. Özellikle RNA izolasyonu sırasında veya sonrasında örnekler DNAse enzimi ile inkübe edilerek DNA kontaminasyonu engellenmelidir. PolyA+-mRNA izolasyonu ise genellikle total RNA elde edildikten sonra polyA+-mRNA bağlayan kolon materyalleri kullanılarak yapılmaktadır. Tüm bu izolasyonlar için çeşitli kitler mevcuttur. Piyasadaki bilinen bu kitlerin bir çoğu optimize edilmiş ve iyi sonuçlar vermektedir. 1x10⁶ hücreden veya 10-50 mg dokudan 10-20 µg RNA kolaylıkla elde edilebilir. Elde edilen RNA ların 260 ve 280 dalga boyundaki absorbsiyon oranlarının 1.8 ve 2.1 aralığında olması arzulanır. RNA’ ların bütünlüğü (integrity) denature agorose jel elktroforezi ile kontrol edilebilir. 28 S ve 18 S olmak üzere iki adet band görülmelidir. DNA kontaminasyonundan şüpheleniliyorsa alınan örnekte β-actin primeri kullanılarak PCR yapılır. Kontaminasyon yok ise her hangi bir ürün oluşmaz.

                              RT- cDNA elde edilmesi

                              RT-PCR uygulamasında tek adımlık uygulama ve iki aşamalı uygulama mümkündür. Tek adımlık uygulamada (RT ve PCR tek tüp içerisinde farklı zamanlamalar ile yapılır) ortama RNA (total 2-20 pmol/µl veya poly (+) RNA, deoksinukleotid mix (hepsinden yaklaşık 200 µM), RNAse inhibitör, spesifik primerler (0.4-1 µM), reverse transcriptase enzimi, DNA polimeraz enzimi konulur (total hacim 50 µl), 3-25mM Mg2Cl ve gerekli tamponlar konulur.

                              1. cDNA sentezi için örnekler 42-50° C 50-60 dk bekletilir (RT aşaması) 2. RT enziminin inaktivasyonu 94° C 2 dk 3. 1-35 siklus 94° C 15 saniye, 55° C 30 saniye, 68° C 1 saniye (PCR aşaması) 4. 68° C 1-5 dk bekleme ve 4° C örnekleri tutma. İki aşamalı RT-PCR’da ise öncelikle RT enzimi ile cDNA elde edilir. Daha sonra spesifik primerler ile PCR yapılır.

                              1. Aşama: Ortama RNA (total 0.005-0.25 µg/µl), deoksinukleotid mix (hepsinden yaklaşık 500 µM), RNAse inhibitör, reverse transcriptase enzimi, (total hacim 30 µl), gerekli tamponlar konulur. cDNA sentezi için örnekler 42-50° C 50-60 dk bekletilir.

                              2. Aşama: Bu aşamada ortama yukarıdaki cDNA örneğinden (2-5 µl), spesifik pirimerler, DNA polimeraz enzimi, deoksinukleotid mix (hepsinden yaklaşık 200-500 µM) konulur. 1. RT enziminin inaktivasyonu 94° C 2 dk 2. 1-35 siklus 94° C 15 saniye, 55° C 30 saniye, 68° C 1dk 3. 68° C 5 dk bekleme ve 4° C örnekleri tutma.

                              Burada verilen dereceler pirimerlere göre optimize edilmelidir. Ayrıca burada bazı basit protokoller verilmiştir; bazı ayrıntılı protokollerin uygulanması ve seçilmesi mümkündür (Touch-Down PCR gibi).

                              NOS proteinleri için örnek primerler
                              Sekans 5’ → 3’ Annealing Temp. cDNA bp
                              eNOS sense CTG GCA AGA CCG ATT ACA CGA 60 450
                              eNOS anti CGC AAT GTG AGT CCG AAA ATG
                              eNOS sense GTG ATG GCG AAG CGA GTG AAG 61 422
                              eNOS anti CCG AGC CCG AAC ACA CAG AAC
                              iNOS sense TCG GAG GCA AAC AGC ACA TTCA 62 462
                              iNOS anti GGG TTG GGG GTG TGG TGA TGT
                              Kaynaklar 1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed.Michael A. Titherradge Human Press Inc. Totowa NJ. 2. Gürdal, H, et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. Pharmacol (basımda).
                              Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                              Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                              Yorum yap


                              • #45
                                Nitrik oksit sentaz mRNA ekspresyonunun Westwrn blot yöntemi ile analizi
                                Prof. Dr. Hakan GÜRDAL*,Doç. Dr. Bahar TUNÇTAN**
                                Ankara Üniversitesi, Tıp Fakültesi, Farmakoloji ve Klinik Farmakoloji Ab.D., Ankara* Mersin Üniversitesi, Eczacılık Fakültesi, Farmakoloji Ab. D., Mersin**


                                Doku ve hücrelerdeki NOS protein düzeyi spesifik antikorlar kullanılarak Western blot yöntemi ile saptanabilmektedir. Her üç farklı eNOS, iNOS ve nNOS için kros reaktivite vermeyen antikorları elde etmek mümkündür. Burada klasik yöntem olan elektroforez ve immunublot yöntemlerinin ayrıntıları anlatılmayacak bazı önemli ayrıntılar ele alınacaktır. Bu ölçümlerdeki en önemli safha NOS proteininin ölçüleceği örneklerin elde edilmesidir. Eğer dokulardan elde edilecek ise dokuların alınması esnasında dokular kandan iyice arındırılmalıdır. Gerekirse böbrek, karaciğer gibi bol kanlanan dokular bir tampon ile alınma esnasında damar yolu kullanılarak perfüze edilmeli ve ortamdaki kan uzaklaştırılmalıdır. Ayrıca hemoglobin kontaminasyonu mümkün olduğunca elimine edilmelidir. (bunlar yapılamıyorsa homojenizasyon sonrası kan ve hemoglobin uzaklaştırıcı diğer yöntemler kullanılmalıdır). Beyin, damar gibi dokularda hemoglobin bulaşma olasılığı olmamaktadır. Kan ve hemoglobin bulaşması homojenizasyondan örnekler hazırlandıktan sonra çok yüksek düzeyde protein elde edilmesine ve ölçümü yapılacak NOS proteinlerinin göreceli olarak ortamda az olmasına neden olmaktadır. Bu durum elektroforez esnasında örneklerin yüklenme miktarının kısıtlı olması nedeni ile ölçüm sınırının altında NOS proteininin yüklenmesine yol açmaktadır. Bunun diğer bir çözümü elektroforez esnasında yüklenebilecek protein miktarının artırılabilmesi olabilir (örneğin elektroforez için %5-8 poliakrilamit-jel kullanılabilir ve 130-160 µg protein yüklenebilir).

                                Örneklerin hazırlanması Örnekler 100 mg doku veya 1x10⁶ hücre 1-3 ml (bu miktar ön deneylerle saptanmalıdır) homejanizasyon tamponu (HT) içinde homojenize edilebilir. Homojenizasyon cam-cam, ultraturraks, sonikasyon, hücrelerin ince uçlu şırıngadan geçirilmesi gibi yöntemlerle soğuk ortamda ve hızlı yapılmalıdır. NOS proteinleri sitozolde, hücre membranında ve hücre içi yapıların membranlarında bulunabilmektedir. HT içinde bir miktar deterjan olması membranlara bağlı NOS proteinlerinin serbest proteinler haline gelmesini sağlayacaktır. Yüksek santrifügasyon hızı ile (100.000Xg, 60 dk, sitozol) membranlar ve diğer hücre elemanları tamamen çöktürülerek supernatan alınır ve çözünür, serbest proteinler elde edilebilir. Bir diğer yöntemde daha düşük bir santrifügasyon ile (10.000-30.000xg, 30 dk) süpernatan alınır ve çözünür, serbest proteinler ile birlikte bazı hücre membranlarıda elde edilir. Bu iki yöntem de denenebilir. Eğer bir sistemde membranlara bağlı NOS miktarı çok ise ikinci yöntem denenmelidir.

                                HT (pH 7.2): 320 mM sukroz, 10mM Tris-HCl, 1 mM EDTA, 1mM DTT, 10 µg/ml leupeptin, 2 µg/ml aprotinin, 1 mM phenylmethylsulfonyl fluoride.
                                Bu tampona yukarıda değinildiği gibi deterjan eklenebilir (16 mM, (3-[(3-cholamidopropyl) dimethylammonio]-1-propane-sulfonate (CHAPS). Bu tampondan sukroz çıkarılabilir.

                                Alınan supernatanlardan protein ölçülmeli ve hemen elektroforez yapılmayacak ise örnekler -70-80º C°de dondurulmalıdır. Bu örneklerden 20-130 µg aralığında protein kullanmak mümkündür. Yüksek miktarlarda protein (130-160 µg) yüklenecek ise jelin akrilamit yüz-desi düşürülebilir (%5 gibi). Bu aşamadan sonra elektroforez yapılarak proteinler ayrıştırılır. Daha sonra proteinler jelden blot kağıdına veya zarına (protein bağlama özelliği olan bir zar veya kağıt) transfer edilir.

                                İmmunobloting

                                Proteinleri içeren zarlar öncelikle uygun solusyon ile (süt ve protein içeren solusyon) inkübe edilir ve yıkanırlar (8-16 saat 4º C, Bloke etme, Blocking). Bu aşama NOS proteinleri için kullanılacak antikorların nonspesifik bağlanmalarını engellemeyi amaçlamaktadır. Daha sonra Zarlar uygun bir tampon ile (PBS, Tris içeren) yıkanır ve primer antikor ile inkübasyona geçilebilir (1 saat oda sıcaklığı). Spesifik antikorlar eNOS için Santa Cruz, nNOS için Calbiochem ve iNOS için Transduction Lab. şirketlerinden elde edilen antikorlar tarafımızdan denenmiştir. Bu şirketler dışında Oxis, Sigma ve bazı diğer şirketlerinde antikorları bulunmaktadır. Firmalar kullan- 2 iNOS eNOS nNOS Sıçan kalbi Sıçan böbreği Sıçan kalbi Sıçan böbreği Sıçan beyin ma klavuzlarında 1:1000 düzeyinde dilusyon önermektedirler fakat deneyimlerimiz sonucu eNOS ve nNOS için 1:3000-10.000 ve iNOS için 1:1000 dilüsyonlarının daha iyi oldukları ve daha az nonspesifik band verdikleri görülmüştür. Bu inkübasyondan sonra tekrar uygun bir tampon ile zarlar yıkanır ve sekonder antikorla inkübasyona geçilir (1 saat, oda sıcaklığı). Bu inkübasyondan sonra yıkama işlemi tekrar yapılır. Bandların saptanmasında ECL tekniği kullanılması oldukça kolay ve verimlidir. Burada da sekonder antikorların eNOS ve nNOS için 1:8000-10.000 ve iNOS için 1:1000 dilüsyonları iyi sonuç vermektedir. eNOS proteini 133 kd (120-140 kd), iNOS 130 kd (120-140 kd) ve nNOS 160 kD (150- 170 kD) aralıklarında görülebilmektedir. Moleküler ağırlıkları yüksek olduğu için moleküler ağırlık standartları da ona göre seçilmelidir.

                                Kaynaklar

                                1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed. Michael A. Titherradge Human Press Inc. Totowa NJ. 2. Gürdal H et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. Pharmacol (basımda). 3. Tunçtan B et al. Inhibition by nitric oxide and cyclooxygenase of cytochrome P450 4A expression and activity contributes to endotoxin-induced hypotension in rats. Nitric Oxide: Biology and Chemistry (basımda) (2005).
                                Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                                Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                                Yorum yap

                                Hazırlanıyor...
                                X