Duyuru

Collapse
No announcement yet.

Karahindiba, Löwenzahn, Taraxacum officinale

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Karahindiba, Löwenzahn, Taraxacum officinale

    KARAHİNDİBA

    Çok Yıllık | 0,2-0,8m | 4-6Aylar | Ca,Ho,Na | Otu, Kökü

    Karahindiba, Löwenzahn, Taraxacum officinale
    Gelin göbeği (WITH) WIGGERS
    Aslan dişi Syn: Taraxacum vulgare SCHRAK
    Radika Leontodon officinale WITH.
    Yabani Acımarul “ taraxacum L.
    Üfürük çiçeği
    Hindibaotu
    İnek çiçeği
    Şifalı Karahindiba

    Familyası: Bileşikgillerden, Korbblütler, Asteraceae

    Drugları: Karahindiba yaprağı; Taraxci folium
    “ kökü; “ radix
    “ otu ve kökü; Taraxci herba cum radix

    Karahindibanın genellikle otu (yaprak, çiçek ve sapları) ve kökü birlikte çay, tentür ve natürel ilaç yapımında kullanılır.

    Giriş: Günümüzde Karahindibanın bir alt türü olan 50-60çeşit mevcuttur ve bunların içinden sadece Şifalı Karahindiba olarak bilinen bu tür kullanılır. Diğer türler pek kullanılmaz. Türkiye'de eskiden salata yerine kullanıldığından Yabani Acımarul diye de anılır. Avrupa'da 16. yy.a kadar bilinmeyen ve ancak 1546'dan itibaren Şifalı bitkiler kitabında yer almıştır ve bazı yazarlara göre Barbarlar (Türkler, Hunlar) tarafından Avrupa'ya getirilmiştir. Avrupalılar Hıristiyan olmayan her milleti Barbar sayarlar, oysa Türkler gittikleri yerlere Medreseler (üniversiteler), Hanlar, Hamamlar, Kervansaraylar, Sulama kanalları götürürken Avrupalılar takriben 50 milyon Kızılderili'yi 2,5 milyon Cezayirliyi vahşice yok etmişlerdir. Ayrıca Romanın kurucusu Rome ve Romelus kardeşlerde Etrüsk-lüdür yani Türktür.

    Botanik: Karahindiba otu şimdiye kadar incelediğimiz bitkilerden farklı bir yapıya sahiptir çünkü gövdesiz bir bitkidir. Yaprakları rozet şeklinde direkt kökten çıkarak çevresine yayılır ve bu şekil rozete benzediğinden bu isimle adlandırılır. Yapraklarının kenarı irili, ufaklı, dişli veya odun testeresinin ağzı şeklinde, bazen de aslan dişi gibi bu nedenle de Aslan dişi otu diye de anılır. Yaprak uçları mızrak veya mala şeklinde, üst yüzeyi koyu yeşil, alt yüzeyi açık yeşil ve ortada ana bir damar mevcuttur. Çiçekleri takriben 10-40cm uzunluğunda, içinde sarımsı beyaz süt kıvamında bir sıvı bulunur ve tepesinde 100-200adet dil şeklindeki sarı taç yapraklardan meydana gelen bir çiçek bulunur. Çiçekleri olgunlaştıktan sonra dökülerek dağılmaz aksine büzülerek toplanır ve kupa yaprakları tarafından iyice sarılarak koni şeklini alır. Koni içinde olgunlaşan tohumlar kupa yapraklarının geri doğru kıvrılması ile ortaya çıkar ve her tohumun gerisinde 1-3cm uzunluğunda bir sap ve bu sapın üzerinde şemsiye şeklinde tüycükler bulunur. Olgunlaşan tohumları rüzgarlı havada tüycükleri alarak uzaklara taşır ve böylece Karahindibaya hemen her yerde rastlamak mümkün olur. Kökleri serçe parmak kalınlığında 10-20cm uzunluğunda ayrıca saçak şeklinde yan köklere sahiptir ve içinde süt gibi beyaz bir bitki özü mevcuttur.

    Yetiştirilmesi: İtalya ve Fransa'da özel olarak yetiştirilir ve salatası yapılır. Bu özel yetiştirilen Karahindiba, yabani olarak yetişene göre oldukça büyüktür. Türkiye'nin hemen her bölgesinde yetiştirmek mümkündür.

    Hasat zamanı: Kökleri ya Mart-Nisan veya Ağustos-Eylül aylarında topraktan çıkarıldıktan sonra yıkanır, güneşli ve havadar bir yerde kurutulur. Maalesef şifalı bitkiler toplama, kurutma, paketleme ve depolama işlemleri sırasında çok yanlışlar yapılmaktadır. Bitkinin şifalı kısmı yaprak veya çiçekleri ise asla Güneş altında kurutulmaz ve mutlaka gölgede kurutulmalıdır. Ayrıca örneğin bitki 5 günde kurudu ise, 2 gün daha kurumada bırakmak mahzurludur, çünkü birleşimindeki eterik yağları kaybettiğinden kalitesi düşer. Sadece bitki kökleri Güneş'te kurutulur ve kurur kurumaz hemen paketlenip depolanması gerekir. Şifalı bitkilerin Aktarlar'da açıkta satılması kalitesini kısa sürede düşürür ve etkisini oldukça azaltır.

    Birleşimi: Yapraklarının birleşimindeki en önemli maddeler;
    a) Sesquiterpenlakton türevleri;Taraxinasit-1¹-O-b-D-glucopyranosid (Taraxinasit-β-D-glikozit)
    b) Flavonit türevleri; Apigenin-7-O-glikozit ve Luteolin-7-O-glikozit
    c) Triterpen türevleri; Sitosterol, Stigmasterol ve Campesterol
    d) Vitaminlerden; B1, B2, B3, C ve E vitaminleri ve Provitamin A
    e) Mineraller özellikle %2,5-4,5 oranında Potasyum, Sodyum, Fosfor, Kalsiyum, Magnezyum, Demir, Çinko ve Bakır
    f) Aminoasitlerden; Asparaginasit ve Glutaminasit içerir.

    Köklerindeki en önemli maddeler;
    a) Sesquiterpenlakton türevleri; Taraxakolid-β-D-glikozit %0,1 (Taraxakolid-1¹-β-D-glukopyranozit), Taraxinasit-β-D-glikozit (Taraxinasidi-1-O-β-D-glikopyranosit) ve 11,13-dihydrotaraxinasit-1¹-O-β-D-glikopyranozit
    b) Triterpen türevleri; Taraxasterol, ψ-Taraxerol, Taraxol, β-Sitosterol, β-Sitosterol-3-D-β-D-glikopyranosit, Arnidiol ve Faradiol. Karahindiba kökü ilkbaharda %2 Inulin içerirken sonbaharda bu oran %40'lara varır. Inulin bir Polisakkarid türüdür. Her türlü sakkaritin hücrelere geçmesi için pankreas hormonu Insülin gerekirken Inulin Insülisizde hücrelere girer.
    c) Vitaminler ve mineraller aynı yapraklarında olduğu gibidir.

    Özellikleri: Soğuk, acı, tatlı ve özel kokuludur.

    Tesir şekli: Karaciğer, pankreas, mide ve bağırsak salgılarını artırıcı, hazmettirici, iştah açıcı, metabolizmayı kuvvetlendirici, kan temizleyici, idrar söktürücü ve hafif tansiyon düşürücü özelliğe sahiptir.

    Araştırmalar:
    1) İlk olarak Hahnemann 1793'de kendi ve öğrencileri üzerinde, 1826' da Langhammer sonra NOAK/TRINKS, Müler, Farrington ve Seveson araştırma, deney ve testler yapmışlardır. hemen bütün araştırmacılar K.hindiba otu ve kökünün başta karaciğer ve safra sonra mide-bağırsaklar ve idrar yollarına etki ettiğini tespit etmişlerdir. (LBH). Bir grup ilim adamının fareler üzerinde Karahindiba ekstresi ile yaptıkları deney, test ve araştırma sonucunda Karahindibanın Atkuyruğu otu ve Ardıç kozalağından daha kuvvetli bir idrar söktürücü (diüretik) olduğu ve belli bir süre bu tedaviye devam (3 ay) edildiğinde %30'a varan oranlarda zayıfladıkları görülmüştür. (TP.573)

    Kullanılması:
    a) Araştırmalara göre KANSER türlerineden özelikle NÖROBLASTOMA karşı etkili olduğu içermiş olduğu yüksek orandaki İnulinin faydalı bakterilerin besini olduğu ve bu nedenle prebiyotik olarak kullanılabileceği ve idrar söktürücüdür.

    Komisyon E'nin 228 nolu ve 05.12.1984 tarihli monografi bildirisine göre K.hindiba ot ve kökü başta safra akışı anormallikleri, iştahsızlık, sindirim rahatsızlıklarına karşı ve de idrar artırıcı olarak kullanılır.
    b) Halk arasında başta karaciğer, safra, pankreas, mesane, böbrekler, mide ve bağırsaklardaki rahatsızlıklara karşı kullanılır. Karahindiba bu rahatsızlıkların haricinde şeker hastalığı, şişmanlık, romatizma türlerinden özellikle artroz (eklem aşınması), eklem iltihaplanması (artritis), gut (nikris), bronşit, ekzema, akneye karşı ve kan temizleyici ve de metabolizmayı çalıştırıcı olarak kullanılmaktadır.

    Açıklama: İç organların beslenmesi ve artık maddelerin dışarı atılmasında çok büyük görevleri olan ara dokular zamanla artık maddeler (Almanca Schlacke Türkçe Cürufta denir) yoğunlaşır. Bu da görevlerini tam olarak yapamadığı gibi başta romatizma, gut, ödem, çeşitli iltihaplanma ve metabolizma bozukluklarına sebep olur. İşte böyle bir durumda bizi birleşiminde vitaminler, mineraller, triterpenler, flavonitler vb. içeren ve de çok yönlü etkilere sahip olan karahindiba vücudumuzu adeta Çamaşır tozu gibi kirlerden, artık maddelerden arınmasını ve temizlenmesini sağlar. O halde haydi vücudumuzun bütün azalarını yıkayalım. Almanya'da tıpkı Elam suyu, Kiraz suyu, Şeftali suyu gibi Lahana suyu, Havuç suyu ve Karahindiba suyu imal edilip satılmaktadır. Bu sebze suları, meyve suları gibi tatlı olmayabilir fakat çok sağlıklıdır.

    Çayı: Kurutulmuş, ince doğranmış Karahindiba otu ve kökünden iki kahve kaşığı demliğe konur ve üzerine 300-500ml kaynar su ilave edildikten sonra haşlanır (ınfus) ve 5-10dk demlendikten sonra süzülerek içilir.

    Çay Harmanları;

    Gökçek Diyabet çayı;
    >20 gr Keçisedefi otu
    >20 gr Hindiba otu+kökü
    >20 gr Y.mersini yaprağı
    >20 gr Kantaron otu
    >20 gr Isırgan otu

    Gökçek Romatizma çayı;
    >20 gr Hindiba otu+kökü
    >20 gr Isırgan otu
    >20 gr Atkuyruğu otu
    >10 gr Hıthıt kökü
    >10 gr Karakafes kökü
    >20 gr Harpago kökü

    Gökçek Maraciğer çayı;
    >30 gr Devedikeni tohumu
    >30 gr Hindiba otu ve kökü
    >20 gr Zerdeçal kökü
    >10 gr Y.hindiba kökü
    >10 gr Nane yaprağı

    Gökçek Böbrek ve mesane çayı;
    >20 gr Isırgan otu
    >20 gr Akhuş yaprağı
    >20 gr Hindiba otu+kökü
    >20 gr Atkuyruğu otu
    >10 gr Orta sifon yaprağı
    >10 gr Altın başak otu

    Gökçek Safra taşlarına karşı çay;
    >30 gr Hindiba otu ve kökü
    >20 gr Pelin otu
    >20 gr Y.hindiba kökü
    >20 gr Civanperçemi otu
    >10 gr Rezene tohumu
    >10 gr Şahtere otu

    Gökçek Deri hastalıkları çayı;
    >20 gr Isırgan otu
    >10 gr Atkuyruğu otu
    >20 gr Hindiba otu+kökü
    >20 gr Akhuş yaprağı
    >20 gr Menekşe otu
    >10 gr Altın başak otu

    Gökçek Karaciğer-safra çayı;
    >20 gr Hindiba otu ve kökü
    >20 gr Devedikeni tohumu
    >20 gr Kantaron otu
    >10 gr Çentiyan kökü
    >10 gr Civanperçemi otu
    >20 gr Zerdeçal kökü

    Gökçek Metabolizma çayı;
    >20 gr Isırgan otu
    >10 gr Civanperçemi otu
    >10 gr Pelin otu
    >20 gr Hindiba otu ve kökü
    >20 gr Atkuyruğu otu
    >20 gr Akhuş yaprağı

    Salatası: Karahindiba otunun yaprakları salata gibi yenir, özel yetiş-tirilenleri daha az acıdır ve bu nedenle rahatlıkla yenebilir.

    Homeoapti'de: K.hindiba otu ve kökünden 100gr çiçek açmaya başladığı andan itibaren toplanarak yıkanır, ince kıyılır ve bir şişeye konur ve de üzerine 500ml %70'lik alkol ilave edilir. şişe güneş ışınlarından uzakta muhafaza edilir ve iki günde bir çalkalamak suretiyle 4-6hafta sonra süzülerek Homeopati'de <> ismi ile anılan tentür elde edilir. Bu tentürden günde 3-4defa 15-20damla 23-ay süreyle alınır.

    Hastalığın belirtileri (semptom):
    1) Dilin üzerinde beyazımsı sarı dalgalı tabakalar
    2) Ağız tadı acımsı veya ekşi ve de aşırı salgı akıtır
    3) İshal saframsı veya kabızlık
    4) İdrar aşırı miktarda ise ve ağrısızsa
    5) Eklem ağrıları batıcı ve yakıcı ve de el-ayaklar sürekli hareketli
    6) İştahsızlık, aşırı susuzluk
    7) Baş ağrısı genellikle giderken ve durunca
    Bu gibi hallerde Karahindiba otu tentürü kullanılır.

    Yan tesirleri: Bilinen bir yan tesiri yoktur.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Karahindiba, Löwenzahn, Taraxacum officinale

    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3


      İnülin nedir? Faydaları ve zararları nedir? Zayıflatır mı?

      Piyasa araştırmalarına göre, bir dönem popüler olan protein tahtını “besinsel life” kaptırmış durumda… Peki inülin nedir? Nasıl kullanılır?
      Piyasa araştırma firmalarına göre, bir dönem en popüler gıda bileşeni olan protein, tahtını “besinsel life” kaptırmış durumda… Peki inülin nedir? Nasıl kullanılır?

      Günümüzde, sağlıklı beslenmeyi hedefleyen birçok kişi daha fazla lif tüketmeye çalışıyor. Özellikle şehir hayatında lif tüketimi olması gerekenden daha düşük kaldığı için bunu faydalı bir amaç olarak değerlendirebiliriz. Gıda üreticileri de tüketicilerin bu talebine, birçok gıda ve içeceğe lif ilave ederek karşılık vermeye çalışıyor. Lif olarak en çok tercih edilen bileşenlerden biri de inulin. Diğer lifler gibi hızlı ve fazla tüketildiğinde gaza, şişkinliğe ve karın ağrısına neden olabiliyor. İşte inülin hakkında bilmeniz gerekenler…

      İnülin nedir?
      İnülin bir tür prebiyotik maddedir (Probiyotik ile karıştırmayın!). Prebiyotik maddeler sindirim sistemimizdeki mikroorganizmalar tarafından kullanılır ve sağlığımızı olumlu etkiler. Bu noktada, 3 farklı prebiyotiğin sağlık açısından faydaları kanıtlanmış durumdadır:
      • İnülin (uzun zincirli inülin olarak da anılır)
      • Oligofruktoz olarak da anılan, kısa zincirli fruktooligosakkarit (FOS)
      • Galaktooligosakkarit (GOS)

      İnülin ve FOS, doğal bir besinsel lif olan hindiba kök lifinden sıcak su kullanılarak elde edilir. GOS ise laktozdan, yani hayvansal kaynaklardan elde edilir. GOS ve etkileri diğer 2 bileşen kadar detaylı incelenmemiştir.

      Nelerde bulunur?
      İnülün düşük miktarlarda tam tahıllarda; kuşkonmaz, sarımsak ve muz gibi bazı meyve ve sebzelerde bulunur.

      Nerelerde kullanılır?
      Uzun zincirli inülin ağızda kremamsı bir his bırakır. Bu özelliği sayesinde ürünlerde bulunan yağ içeriğini azaltmak amacıyla, yağ yerine kullanılabilir. Kısa zincirli inülin (FOS) ise daha tatlıdır. Gıda ve içeceklerde şeker ve bazı şeker ikamelerinin azaltmak için, onların yerine kullanılır. İnülin takviyeleri ile bazı gıda ve içecekler kısa ve uzun zincirli inülin bir arada kullanılır. Bu karışımlar araştırmalar da yaygın şekilde incelenmiştir.

      İnülinin faydaları ve zararları nedir?
      Hindiba kökü lifi ince bağırsağınızı geçerek kalın bağırsaktaki bakteriler tarafından fermente edilir. Yukarıda bahsedildiği gibi, kısa bir sürede çok miktarda almak sindirim sisteminizde rahatsızlığa yol açabilir. Bu, tüm lifler için geçerli bir durumdur. Bazı kişiler inülin ve FOS’a daha duyarlı olabilir. Böyle bir durumu olanlar tüketimi sınırlandırmalıdır. İnülinin sindirim sistemi üzerinde bazı faydaları bulunmaktadır. Kısa ve uzun zincirli inülin karışımının şişkinliği azalttığı ve kabızlığa yardımcı olduğu bilinmektedir. Lif tüketimi, bağırsaktaki faydalı bakteriler olan Bifidobacteria ve Lactobacilli sayısını arttırmaktadır. Avrupa Gıda Güvenliği Otoritesi (EFSA), günlük 12 gram hindiba inülini veya FOS tüketmenin kabızlığı hafiflettiği beyanına onaylamaktadır. GOS için yeterli araştırma henüz yapılmış değildir.

      İnülinin diğer faydaları
      İnülin ve FOS, kalori alımını ve kandaki şeker seviyesini azaltabilir, kalsiyum emilimini arttırabilir.
      Hindiba kökünün midenin boşalma süresini uzattığı ve beyindeki iştah sinyallerini baskıladığı bilinmektedir. Bu özelliğiyle daha az yemenize yardımcı olur.

      Kilo vermeyi kolaylaştırıyor, kalori alımını azaltıyor
      Yapılan bazı çalışmalarda, normal ve fazla kilodaki yetişkin ve çocuklara 12 ile 16 gram arasında değişen miktarlarda hindiba kökü takviyesi verilmiş ve kalori alımlarının düştüğü belirlenmiştir.Bir diğer çalışmada, prediyabet durumunda olan ve kilo vermek amacıyla diyetisyene giden bireylerin inülin kullandığında daha fazla kilo verebildiği belirlenmiştir. İnülinin yemek sonrasında glikoz ve insülin seviyelerini düşürdüğü de bilinmektedir. Tüm bu araştırmalara rağmen, inülinin tip 2 diyabet ve prediyabet hastalarında nasıl etki gösterdiğini tam olarak anlamak için daha fazla araştırmaya ihtiyaç vardır. Kalsiyum emilimi
      Yapılan araştırmalar, günlük 8 gram hindiba kökü lifi almanın kalsiyum emilimini arttırdığını gösteriyor. Hindiba kökü kalın bağırsağı daha asidik hale getiriyor, bu sayede emilimi yapan bölgenin yüzey alanı artıyor ve kalsiyum emen proteinleri daha çok üretiyor.


      Ne kadar inülin almalısınız?
      Tarih öncesi dönemlerde, daha fazla sebze ve bitki yenilen dönemlerde atalarımızın günde 135 gram kadar inülin tükettiği tahmin ediliyor. Bu, bağırsaklarımızın bugün kaldıramayacağı kadar yüksek bir seviye. Ancak araştırmalar bakarsak,
      • Günde 5 gram inülin, bağırsaktaki iyi bakterilerin sayısını arttırıyor
      • Daha iyi kalsiyum emilimi için günde 8 gram veya daha fazla tüketmek gerekiyor
      • Düzenli bağırsak hareketi/tuvalete çıkmak için günde 12 gram inülin ve FOS almak gerekiyor

      İnülin tüketmeye yeni başlıyorsanız, vücudunuza adapte olması için zaman tanıyın ve tüketiminizi kademeli olarak arttırın. Kabızlığı önlemek için aynı zamanda bol miktarda su içmeyi de unutmayın.

      Tek lif kaynağı inülin olmamalı!
      Lif kaynağı ve prebiyotik olarak birçok fayda sunsa da, beslenmenizdeki lifin büyük bir kısmının diğer besin maddelerini de sağlayan sağlıklı gıdalardan almanız gerektiğini unutmayın. Yalnızca life odaklanarak tüm ihtiyacı inülin takviyeleriyle karşılamak başta vitamin ve mineral olmak üzere diğer besin maddelerini yetersiz almanızla sonuçlanabilir.
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        Taraxacum officinale özütü, pediatrik kanser hücreleri üzerinde antitümör etkiler gösterir ve ökseotu tedavisini geliştirir.

        K Menke, M Schwermer, J Felenda, C Beckmann, F Stintzing, Bir Schramm, TJ Zuzak
        Öz Amaç: Taraxacum officinale (karahindiba) ekstreleri yetişkin kanser hücreleri üzerinde antitümör etkiler gösterirken, tek bir ajan olarak veya ökse otu ekstraktları ile kombinasyon halinde pediatrik tümör hücreleri üzerindeki etkileri şimdiye kadar bilinmemektedir.

        Gereç ve yöntemler: Sulu fermente edilmiş bir Taraxacum officinale özütünün (Taraxacum) pediatrik bir kanser hücre hattı paneli üzerindeki anti-proliferatif etkileri, hücre canlılığı deneyleri (MTT) ile değerlendirildi. İki nöroblastoma hücre hattında, SH-SY5Y ve Kelly'de, hücre döngüsü dağılımı (PI boyama), mitokondriyal bütünlük (MitoTracker boyama), invazyon (Boyden oda testi) ve migrasyon (Scratch-assay) üzerindeki etkiler ile sinerjik etkiler Taraxacum ve otu preparatlar Iscucin eş tedavi araştırılmıştır.

        Sonuçlar: Test edilen tüm kanser hücre hatları, Taraxacum'a normal insan fibroblast hücre hattı NHDF-C'den daha duyarlıydı. Nöroblastoma hücre dizilerinde Taraxacum, apoptoza ve mitokondriyal bütünlüğün kaybına ve ayrıca istila ve göçün engellenmesine neden oldu. Taraxacum ve ökse otu özlerinin eşzamanlı tedavisi sinerjik etkiler ortaya çıkardı.
        https://pubmed.ncbi.nlm.nih.gov/30219442/


        İnülin NEDİR ?
        İnülin, soğan, sarımsak, pırasa, hindiba ve enginar gibi birçok sebzede bulunan bir fruktoz oligomeridir. Oligofruktoz ise inülinin enzimatik hidroliz ile elde edilir. Son yıllarda inülün ve oligofruktoz, jel, kıvam verici ve tatlandırıcı özelliklerinden dolayı, gıda sanayisinde kullanılmaktadır.

        İnülin ve oligofruktoz, diğer karbonhidratlara göre daha düşük enerji içerir. Bilinen en önemli fonksiyonu, bağırsaklarda bifidobakterilerin gelişmesini uyarmalarıdır. Bunlara ek olarak, inülin ve oligofruktoz, şeker hastalığı, kalp hastalıkları, kanser ve osteoporoz riskini azaltır.

        İnülin nasıl elde edilir?
        inülin hindiba kökünden tamamen doğal bir yolla, sıcak su ekstraksiyonuyla, oligofruktoz ise inülinin özel enzimlerle kısmen parçalanmasıyla elde edilir. İnülin ve oligofruktoz doğal birer hammadde olarak kabul edilirler ve bu nedenle E kodları yoktur.

        İnülin’in faydaları nelerdir?
        İnülin, kilo kontrolü ve yüksek kolesterol seviyelerinin düşürülmesinde de etkili olabilir. İnulin insan sindirim sisteminden sindirilmeden geçer. Bunu sindirebilen ise bakterilerdir, bu sayede bakteri sayısını da artırır.

        Bu da şu demektir, faydalı bakterilerin sayısının artması inulin maddesinin prebiyotik olarak görev yapmasına neden olur.

        İnülin nerelerde kullanılır?
        İnülinin gıdalarda kullanımı gün geçtikçe artmaktadır. Bunun nedeni farklı, alışılmadık özellikleri olmasıdır. Şeker, yağ ve un yerine kullanılabilir. Inülin, şeker ya da karbonhidrat kalorisinin %75’ini ve yağ enerjisinin %33’ünü içerir.

        Bağırsak bakterilerinin artmalarını sağlarken, aynı zamanda kalsiyum ve magnezyum emilimini arttırır. Besinsel olarak, çözünebilir bir liftir ve genellikle prebiyotik olarak görülür. Hassas ve alışık olmayan vücutlarda fazla inülin tüketimi, bağırsaklarda gaz oluşumuna ve şişkinliğe neden olur.

        Hidrolize olmamış inülin, yakıt elde etmek için fazla inülin içeren mahsulleri etanole çevirmek amaçlı yapılan simultane sakkarifikasyon ve fermantasyon işlemlerinde etanole çevrilir. Tıpta inülin, glomerular filtrasyon hızını (GFR) belirleyerek karaciğer fonksiyonlarının ölçülmesine yardımcı olarak kullanılır.

        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5


          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6


            Karahindibanın ( Taraxacum Officinale ) Tip 2 Diyabette Fizyolojik Etkileri

            Fonyuy E. Wirngo , Max N. Lambert ve Per B. Jeppesen
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
            Git: Soyut


            Tip 2 diyabetin (T2D) ekonomik yükündeki muazzam artış, alternatif ve daha ucuz ilaçlar arayışına yol açmıştır. Karahindiba, potansiyel anti-diyabetik özelliklere sahip biyoaktif bileşenlerin ilgi çekici bir profilini sunar. TaraxacumAsteraceae familyasından bir cins, Kuzey yarımkürenin ılıman bölgesinde bulunur. Dünyanın çeşitli bölgelerinde mevcuttur. Birçok ülkede T2D'nin kontrol ve tedavisi için gıda olarak ve bazı ülkelerde terapötik olarak kullanılmaktadır. Karahindiba anti-diyabetik özellikleri biyoaktif kimyasal bileşenlere atfedilir; bunlara şikorik asit, taraxasterol (TS), klorojenik asit ve seskiterpen laktonlar dahildir. Bugüne kadar biyoaktif bileşenlerinin T2D üzerindeki etkilerine çok az ilgi gösterilmesine rağmen, çalışmalar bir dizi hastalığın tedavisi için karahindibanın faydalı farmakolojik profilini özetledi. Bu derleme, karahindiba ile ilgili önceki çalışmaları ve onun T2D'nin tedavisi ve önlenmesi için potansiyelini özetlemekte, anti-diyabetik özelliklerini, kimyasal bileşenlerinin yapılarını vurgulamaktadır. ve T2D'deki potansiyel etki mekanizmaları. İlk araştırmalar umut verici görünse de, karahindibanın hücresel etkisine ilişkin veriler sınırlıdır, bu da klonal β-hücre dizileri (INS-1E), α-hücreleri ve insan iskelet hücre dizileri üzerinde daha fazla çalışmayı gerektirmektedir. T2D'nin kontrolünde ve tedavisinde kullanılabilir. Aslında, kapsamlıKarahindiba türevli bileşiklerin T2D üzerindeki etkilerinin altında yatan farmakolojik, fizyolojik ve biyokimyasal mekanizmaları daha fazla araştırmak için in vitro , in vivo ve klinik araştırmalar gereklidir.

            Anahtar Kelimeler: tip 2 diyabet, karahindiba, klorojenik asit, hindiba asidi, taraxasterol, seskiterpen
            Kısaltmalar : ADP - adenosin difosfat; AFLD - alkolik yağlı karaciğer hastalığı; AMPK - adenosin monofosfatla aktive olan protein kinaz; ATP - adenosin trifosfat; cAMP - siklik adenosin monofosfat; CGA - klorojenik asit; CoA - koenzim A; CRA - hindiba asidi; DAG - diasilgliserol; DBD - DNA bağlama alanı; DNA - deoksiribonükleik asit; DPPH - 2,2-difenil-1-pikrilhidrazil; Dw - kuru ağırlık; FOS - fruktoz oligosakarit; G6P - glukoz-6-fosfat; GDP - guanozin 5'-difosfat; GLP-1 - glukagon benzeri peptit 1; GLUT2 - glikoz taşıyıcı 2; GLUT4 - kas glikoz taşıyıcı protein 4; GPCR - G proteinine bağlı reseptör; GTP - guanozin trifosfat; HNB - 2-hidroksi-5-nitrobenzenaldehit; HPLC - yüksek basınçlı sıvı kromatografisi; IC 50- yarı maksimum inhibitör konsantrasyon; IDF - Uluslararası Diyabet Federasyonu; IDX-1 - adacık duodenum homeobox 1; IL-1a - interlökin 1 alfa; INS-1E - sıçan insülinoma klonal beta hücre dizisi; IR - insülin reseptörü; IRS-1 - insülin reseptörü substratı 1; Km - Michaelis sabiti; IP3 - inositol trifosfat; IRS-1 - insülin reseptörü substratı 1; LBD - ligand bağlama alanı; LC-DAD - (foto) diyot dizisi algılamalı sıvı kromatografisi; LPS - lipopolisakarit; MAPK - mitojenle aktive olan protein kinaz; NADH - nikotinamid adenin dinükleotit; NAFLD - alkolsüz yağlı karaciğer hastalığı; NF-kb - nükleer faktör kappa B; NO - nitrik oksit; PI3K - fosfatidilinositol 3 kinaz; PKA - protein kinaz A; PKC - protein kinaz C; PPAR-y - peroksizom proliferatörü ile aktive edilen reseptör gaması; ROS - reaktif oksijen türleri; RxR - retinoid X reseptörü; SEL - seskiterpen laktonlar; SUR1 - sülfonilüre reseptörü 1; T2D - tip 2 diyabet; ETİKET - triaçilgliserol; TNF-a - tümör nekroz faktörü; K - Taraxacum officinale; TS - taraksasterol; UPLC-MS/MS - ultra performanslı sıvı kromatografisi - tandem kütle spektrometrisi; UV/VIS - ultraviyole görünür; DSÖ - Dünya Sağlık Örgütü

            Git: 1. Giriş


            Hem gelişmiş hem de gelişmekte olan ülkelerdeki toplumlar, tip 2 diyabetin (T2D) metabolik bozukluğu tarafından yutulmaktadır. Diyabet insidansındaki muazzam artış nedeniyle dünya büyük bir klinik ve ekonomik yük ile karşı karşıyadır. Bugün dünyada yaklaşık 382 milyon kişinin T2D olduğu tahmin ediliyor ve 2035 yılına kadar önleyici tedbirler alınmazsa bu sayının 200 milyondan fazla artması bekleniyor[ 1].]. Bir WHO araştırması, dünya nüfusunun %70-80'inin, öncelikle geleneksel tıbbın bulunmaması ve ekonomik engellerin olmaması nedeniyle geleneksel olmayan ilaçlara güvendiğini göstermiştir. Geçmişte, bitki kaynaklı terapötikler, diyabeti tedavi etmek için olası bir maliyet-etkin araç olarak geniş çapta göz ardı edilmiştir; bu nedenle kanıta dayalı etkinlik belgeleri genellikle mevcut değildir. Bu eksikliğe rağmen, bitki kaynaklı terapötiklerin, mevcut konvansiyonel ilaçlara kıyasla daha iyi etkinlik ve azaltılmış yan etkilere yol açabilen umut verici alternatif tedavi önlemleri kaynakları sağladığı iyi bilinmektedir [ 2]. Bu nedenle, gelişmiş ülkelerde yararlı sağlık özelliklerini koruyan bitkilerden ve diğer doğal kaynaklardan gıda, nutrasötikler ve tıbbi ürünlere artan bir ilgi vardır [ 3 ].

            Uluslararası Diyabet Federasyonu'nun (IDF) istatistiklerine göre, T2D'li kişilerin %80'i düşük ve orta gelirli ülkelerde yaşıyor. Daha da endişe verici bir şekilde, diyabetli 175 milyon kişinin hala teşhis edilmediği tahmin edilmektedir [ 4 ]. Daha yoksul bölgelerde, diyabet tedavisi çok pahalıdır, bu da tıbbi tedaviyi ulaşılmaz kılmakta, yetersiz sağlık bakımı ve alternatif tıp kullanımına neden olmaktadır [ 5 ]. Biyoaktif bitkilerin kullanımını içeren geleneksel tıp, diyabetik semptomları hafifletme, iyileşmeyi sağlama ve sağlığı iyileştirme potansiyeli göstermiştir [ 6 ]. Diyabet tedavisi, biyoaktif bileşenlerinden kaynaklanan anti-diyabetik aktivitelerle farklı bitkiler ve poli-bitkisel formülasyonlarla denenmiştir [ 7].]. Dünya çapında insanların yaklaşık %80'i geleneksel tıbbı kullanırken, modern farmasötiklerin yaklaşık %75'i bitkilerden elde edilmektedir [ 8 ]. Şifalı bitkiler, çok çeşitli anti-diyabetik bileşenleri içerir; keşifleri sıklıkla etnomedikal bilgiden kaynaklanır [ 9 , 10 ].

            Obezite, hipertansiyon, kardiyovasküler anormallikler, koroner arter hastalığı ve dislipidemilerle karakterize metabolik sendrom, T2D'nin temel bir özelliğidir. Bu bulaşıcı olmayan hastalık, karbonhidrat, lipid ve protein metabolizmasının yanı sıra pankreas işlevindeki değişiklikleri içeren bir metabolik bozukluktur [ 7 , 11 ]. T2D, plazma glukoz düzeylerinde ilerleyici bir artışa ve karaciğer, endokrin pankreas, iskelet kası, yağ dokusu, merkezi sinir sisteminde biyolojik mekanizmaların bozulmasına neden olabilen insülin ve glukagon salgılanması ve etkisindeki kusurlardan kaynaklanan kronik çok faktörlü bir hastalıktır. ve T2D gelişiminde önemli bir rol [oynar glikoz dengesinin bozulmasına yol açan, gut 12]. T2D pankreas yetersizliği [insülin direnci ve katkıda bulunur mevcut fazla desteklemektedir artan su ve yiyecek tüketimi, yağ oluşumu, hiperglisemi ve artmış insülin üretimi yol açan müşterek bir endokrin bozukluktur 13 - 15 ]. İnsüline duyarsızlık, glikozun yetersiz taşınması ve lipidlerin anormal depolanması nedeniyle kasların, yağın ve karaciğer hücrelerinin düzensizliğine yol açar [ 16 , 17 ]. Sonuç olarak, kronik diyabet körlüğe ve böbrek yetmezliğine neden olabilir ve kardiyovasküler hastalıklar ve felç için önemli bir risk faktörüdür. Ağır vakalarda alt ekstremite amputasyonlarına neden olabilir [ 13 ].

            Bu derlemenin amacı, umut vadeden bir bitkisel aday olan karahindibanın özelliklerini değerlendirmek ve biyoaktif bileşenlerinin insülin fonksiyonu ve glikoz üzerindeki etkilerine ilişkin en güncel literatüre özellikle odaklanarak, T2D ile ilgili çeşitli biyolojik aktivitelerini araştırmaktır. homeostaz.

            Git: 2. Karahindibanın kökeni ve botanik


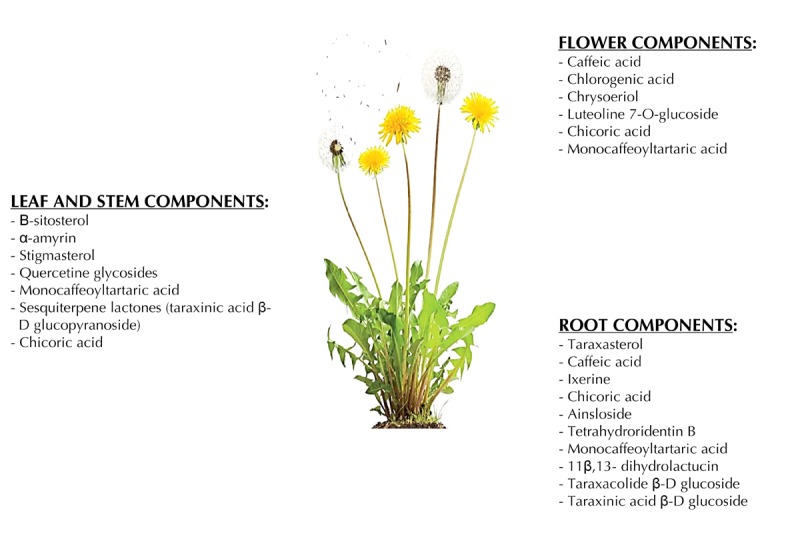
            Karahindiba, Taraxacum cinsinin bir bitkisidir ve Asteraceae ailesinin bir üyesidir. Uzun zamandır şifalı bir bitki olarak kullanılmaktadır. Figür​Şekil 11formülasyonlar için kullanılabilecek çeşitli bileşenlerini içeren karahindiba bitkisinin bir görüntüsünü gösterir [ 18 ]. Karahindiba, ya vahşi kaynaklardan yetiştirilen ya da ekili olarak tıbbi amaçlar ve gıda için üretilir. Ağırlıklı olarak Bulgaristan, Romanya, Macaristan ve Polonya'da yetiştirilir ve üretilir [ 19 ]. Karahindiba tropiklerde, serin yaylalarda (1.200-1.500 m rakım) ve kuzey yarım kürenin etrafındaki sıcak ılıman ve ılıman bölgelerde bulunur. Kuraklığa ve dona karşı dayanıklıdır [ 20 , 21 ].


            Karahindiba ve çiçek, gövde ve yaprak seviyesinde bulunan bazı bileşenlerin görüntüsü.

            Taraxacum taksonomik olarak karmaşıktır. Yarı arktik ve kuzey ılıman bölgelerde, yaklaşık 2800 bilinen tür vardır [ 22 ]. Taraxacum officinale WEBER WIGG türü Avrupa kökenlidir ve tıbbi amaçlar için kullanılırken, Taraxacum platycarpum T2D ve karaciğer hastalıklarını tedavi etmek için geleneksel bir Çin tıbbı olarak kullanılır [ 23 ]. Çok yıllık bir ot olan karahindiba, ortalama uzunluğu 15-30 cm olan kalın bir kazık kök üretir [ 24]. Karahindiba toprak yüzeyinin altında kesilse bile, kalan kökler yeni bitkiler üretebilir. Ortalama olarak, her bitki, tohumların rüzgarla dağılmasına izin veren, tüylü bir pappusa sahip kahverengi, konik meyveler içeren 5 ila 10 çiçek geliştirir. Genç karahindiba bitkileri camın altında yetiştirilir ve gübre toprağına serilir. Kuzey Avrupa'da genellikle Nisan ve Haziran ayları arasında ekilir [ 25 ].

            Rusya, Hindistan ve Çin'de karahindiba, hepatik ve hiperglisemik etkileri nedeniyle etnofarmakolojide geleneksel bir halk tıbbı olarak kullanılmıştır [ 8 ]. Mineraller ve vitaminler gibi zengin bir mikro besin kaynağı olduğu için genellikle bir gıda (salata) olarak tüketilir [ 26 ]. Karahindiba, T2D, kabarcıklar, dalak ve karaciğer şikayetlerinin tedavisi dahil olmak üzere çok sayıda terapötik faydaya sahiptir [ 27 ] ve T2D'nin kontrolü için Türkiye ve Meksika'da popüler bir geleneksel ilaç olarak kullanılmaktadır [ 28 ].

            Git: 3. Karahindibanın besleyici, kimyasal ve biyolojik özellikleri


            Karahindibanın tandem sıvı kromatografisi ve kütle spektrometrisi analizi, hücreleri oksidasyondan ve hücresel hasardan koruyan zengin β-karoten kaynaklarını ortaya çıkardı [ 29 ]. Son zamanlarda, biyokimyasal analizler, Taraxacum officinale yapraklarında ve saplarında 34.08 ± 1.65 g/kg polifenolik miktarı ile karahindibanın en bol bulunan bileşeni olarak şikorik asidi (CRA) tanımladı [ 30 - 32 ]. Polifenollerin konsantrasyonu çiçeklerde ve yapraklarda saplardan daha yüksektir [ 33 ]. Ayrıca önemli mevsimsel farklılıklar vardır; metilsteroller kışın yüksek oranda bulunurken, sitosterol ve sikloartenol esterler yoğun güneşe maruz kalma dönemlerinde daha yaygındır [ 34 ].

            Karahindiba kökleri karbonhidratlar (örneğin inülin), karotenoidler (örneğin lutein), yağ asitleri (örneğin miristik asit), mineraller, şekerler (örneğin glikoz, fruktoz ve sakaroz), kolin vitaminleri, müsilaj ve pektin içerir. Köklerin %45'e kadarı, gastrointestinal sistemdeki patojenlerin ortadan kaldırılması ve obezite, kanser ve osteoporozun baskılanması gibi birçok faydalı etkiye sahip olan kompleks bir karbonhidrat (frukto-oligosakkaritler) olan inülinden oluşur [ 35 ]. İçeceklerde kahve ikamesi ve lezzet arttırıcı olarak kullanımının yanı sıra, yaprak özlerinin obezite ve kardiyovasküler hastalıklara karşı etkili olduğu bilinmektedir [ 36 ].

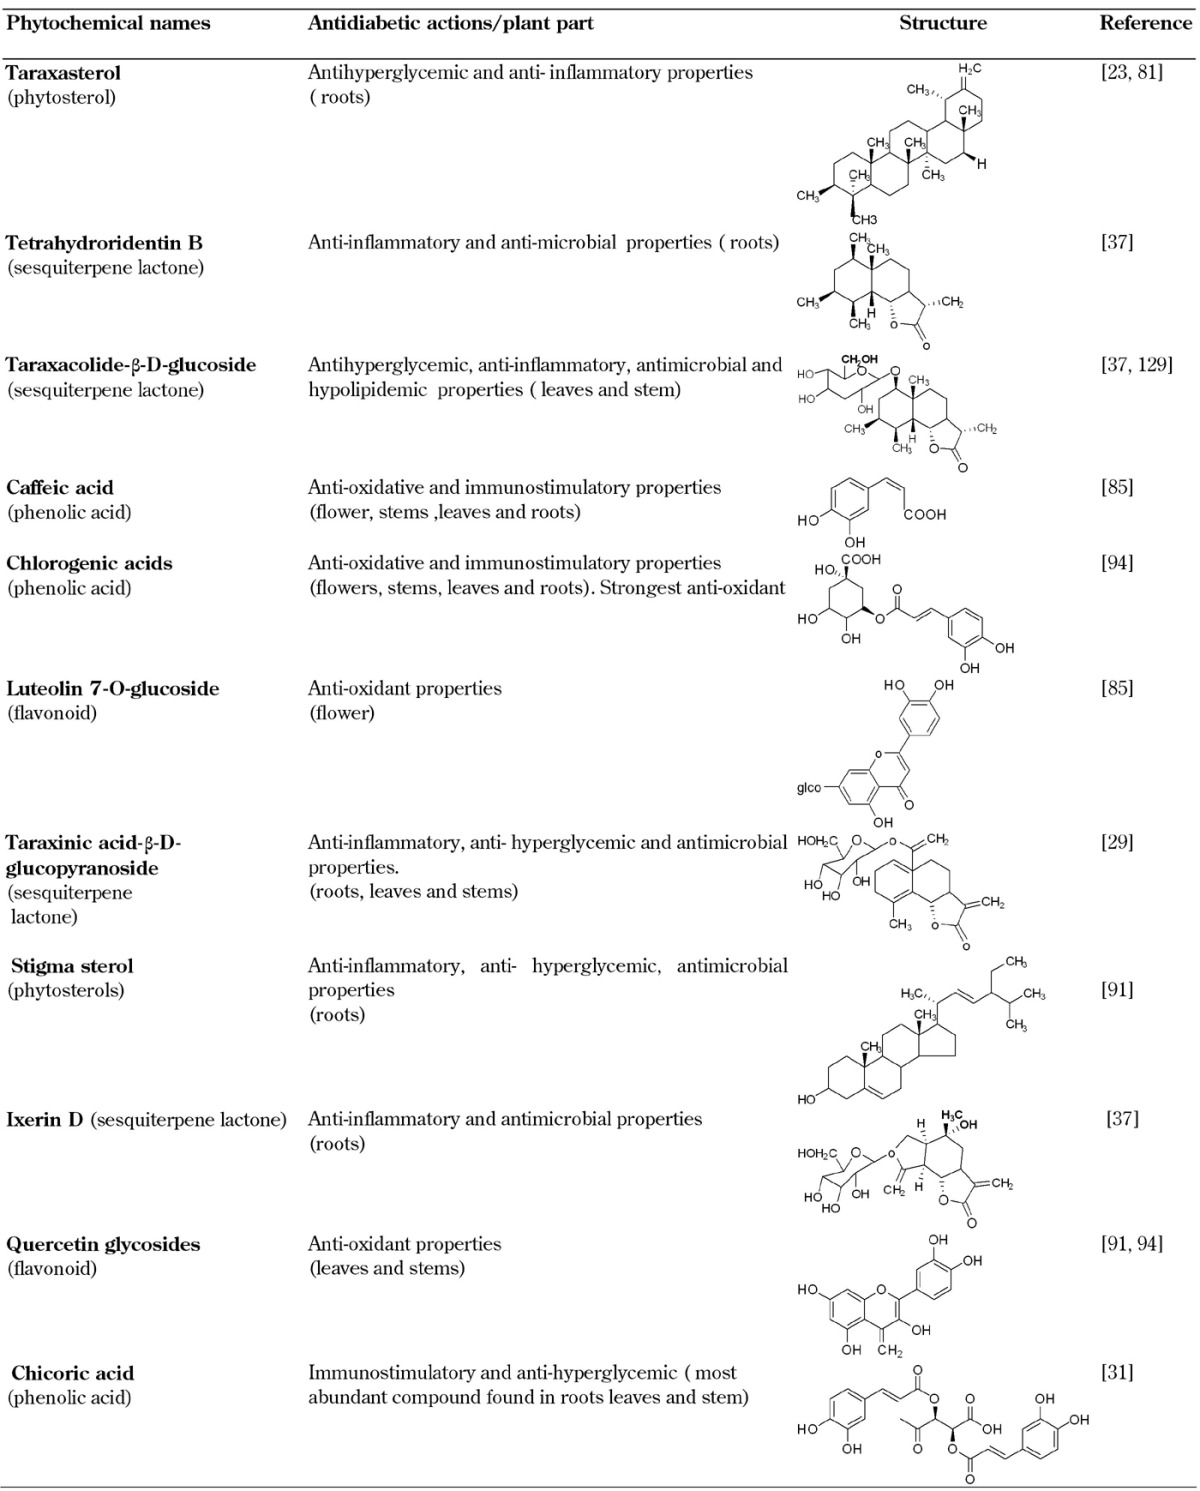
            Karahindiba seskiterpen laktonlar, taraxasterol (TS), tarakserol, klorojenik asit (CGA) ve CRA gibi potansiyel biyoaktif bileşenleri içerir. Bu bileşenler toksik değildir ve potansiyel olarak anti-inflamatuar, anti-oksidatif, anti-romatizmal ve kloretik özellikleri nedeniyle kullanılabilir [ 37 ]. Tabloya Bakın​Tablo 11antidiyabetik etkileri olan karahindiba bileşenlerinin adlarına ve yapılarına genel bir bakış için. Bugüne kadar, ilginç karahindiba bileşenlerinin, özellikle TS ve taraxerol'ün içeriğini araştıran çok az araştırma var. Bununla birlikte, karahindiba, diğer bitkilere kıyasla bu bileşenlerin yüksek bir içeriğine sahip olduğu gösterilmiştir; sinerjik eylemler uygulama olasılığı olan T2D ile ilgili çok çeşitli ilginç biyoaktif bileşenler içerir [ 38 ]. tablo 1

            Antidiyabetik etkiye sahip karahindiba bileşenlerinin adları ve yapıları (Chembiodraw ultra 14.0)
            3.1 Seskiterpen laktonlar


            Seskiterpen laktonlar (SEL), Asteraceae familyasının bitkilerinde yaygındır. Biyolojik profil, anti-bakteriyel, mantar öldürücü, büyüme düzenleyici, anti-mutajenik, beslenmeyi önleyici ve kovucu özellikleri içerir [ 39 ]. Seskiterpenler renksiz lipofilik bileşenlerdir; biyosentezleri, endoplazmik rektikulumda bulunan farnesil pirofosfat yoluyla meydana gelen izopren birimlerindendir [ 40 ]. Seskiterpenler genellikle kökten çıkarılır ve aşağıdakiler de dahil olmak üzere çeşitli bileşenlerden oluşur ( Tablo​Tablo 11):
            • Eudesmanolides tetrahidrodentin B
            • Taraxacolide-0-β-glucopyranoside
            • 13-dihidrolaktusin
            • ikserin D
            • germakranolid asit
            • taraxinik asit
            • β-glukopiranozid
            • Ainslioside
            • 13-dihidrotaraksinik-asit β-glukopiranozid [ 41 ]

            Seskiterpen laktonlardan kaynaklanan acılık, anti-inflamatuar özelliklere sahip olan taraksakolid, dihidro-laktusin, ikserin D, taraxinik asitler, fenil propanoidler ve ainsliosid gibi bileşenlerden kaynaklanır [ 42 ]. Bu bileşenler genellikle glikozitler olarak bulunur. Dil hücrelerindeki acı tat reseptörü (TAS2R16), toksik maddelerin yutulmasını önlemek için koruyucu bir özelliğe sahiptir ve caydırıcı bir duyusal tepki ortaya çıkarır [ 43 ]. Bununla birlikte, sağlığa faydalı maddelerin büyük bir kısmının tadı acı olduğu için bu evrimsel sistemde kusurlar vardır. Karahindibanın sağlığı geliştirici faydaları, bu acı maddelerin ve anti-oksidatif ve anti-inflamatuar aktivitelere sahip fenolik bileşenlerin varlığına atfedilebilir [ 44].]. Anti-inflamatuar özelliklere kimyasal olarak bir karbonil işlevine (a-metil-y-lakton) sahip oksijen içeren halka yapısı aracılık eder. Bu yapı, sistein sülfhidril grupları gibi nükleofillerle reaksiyona girer [ 45 ]. Sistein protein kalıntıları gibi tiyol gruplarının seskiterpen laktonların birincil hedef grubu olduğu bilinmektedir [ 46 ]. Seskiterpen laktonlar, yapılarına atfedilebilen doğrudan antioksidan aktivite göstermezler, ancak alilik alkolün varlığı nedeniyle doğrudan bir antioksidan olarak daha fazla etkinlik gösterebilir [ 47 , 48 ]. 3.2 Taraksasterol


            Taraxasterol (TS), yıl boyunca karahindiba köklerinde yüksek oranda bulunan bir pentasiklik-triterpendir [ 49 ]. Baklagiller, tahıllar, kabuklu yemişler ve tohumlar gibi eskülent bitkilerde ve ayrıca bitkisel yağlarda yaygındır [ 50 ]. Yüksek basınçlı sıvı kromatografisi (HPLC) ultraviyole-görünür (UV/VIS) tespiti kullanan bir çalışmada, Taraxacum Officinale weber'in doğal kök ekstresinde yüksek miktarlarda TS (2.96 µg/ml) ve taraxerol (1.69 µg/ml) bulundu ; kallus kültüründe, kök ekstresi 3.0 ug/ml TS ve 1.75 ug/ml tarakserol içeriyordu [ 38 ]. Ayrıca Carthamus tinctorius , Chrysanthemum morifolium ve Helianthus annuus'un çiçeklerinden elde edilir . Zhang'a göreve diğerleri . (2012), TS, anti-inflamatuar özelliklere sahiptir ve inflamatuar hastalıkların tedavisi için terapötik bir ajan olarak kabul edilir. Dulavratotu, arnika ve hindibada bulunan ve çeşitli biyolojik aktiviteler sergileyen monohidroksi triterpen olarak bilinir [ 51 ]. TS'nin farelerde inflamatuar kulak ödemi üzerinde engelleyici etkileri vardır ve kemo-koruyucu özellikleri koruyabilir [ 52 ]. 1,2-siklopentanofenantren yapısına sahip hidroksillenmiş polisiklik izopentenoidden türetilen doğal olarak oluşan bir steroldür. Gıda endüstrisi için tarımsal ürünlerdeki önemlerinin yanı sıra, steroller, farmasötik endüstrisi için ekonomik bir değeri temsil eden çok çeşitli biyolojik aktivitelere sahiptir [ 53].] TS, Staphylococcus Aureus'a karşı anti-mikrobiyal aktivite göstermiştir ; kanser hücrelerindeki varlığı, çeşitli aşamalarda tümör gelişimine karşı koyabilir [ 54 ]. 3.3 Klorojenik ve şikorik asit


            CGA, kafeik ve kinik asidin bir esteridir ve karahindibanın en zengin fenolik bileşenidir. Bitkinin tüm kısımlarında (kökler, çiçekler, yapraklar ve gövdeler) bulunur. Ultra performanslı sıvı kromatografisi - tandem kütle spektrometrisi (UPLC-MS/MS) kullanan bir çalışma, sentetik ticari standart Trolox ®doğal CGA'dan daha az etkili bir antioksidandır. Karahindiba köklerinden elde edilen parçalanmış etil asetat ekstraktının fenolik içeriğinin incelenmesi, CGA'nın en yaygın bileşen (31.06 mg/g) olduğunu gösterdi. (Foto) diyot dizisi algılamalı (LC-DAD) sıvı kromatografisini kullanan diğer çalışmalar, yaprak özütlerindeki konsantrasyonun, %0.22 kuru ağırlık (Dw) ile 0.85 mg/g; HPLC-UV analizi, yaprak ekstrelerinde konsantrasyonların 8 mg/g olduğunu gösterdi. LC-DAD analizi, köklerde %0.09-0.51 Dw ve yapraklarda %0.77 Dw'de CRA'yı gösterdi [ 55 - 58 ]. Owen ve arkadaşlarına göre . (2014), CGA, 2,2-difenil-1-pikrilhidrazil (DPPH) IC50 (0.033 ± mg/ml) etil asetat kromatografik fraksiyonu ile yüksek fenolik içeriği nedeniyle güçlü bir antioksidandır [55 ].

            CGA, muhtemelen enzimlere veya proteinlerin çoklu alt birimlerine bağlanarak biyolojik aktivitelerini değiştirerek doğal antioksidan özelliği oluşturan başlıca fenolik bileşenlerden oluşur [ 59 ]. Bu nedenle, CGA, 5-0-kafeoilkinik asit yapısına ve reaktif oksijen ve nitrojen türleri için süpürücü aktivitesine dayanan bir anti-diyabetik, antioksidan ve anti-kanserojen madde olarak kullanılabilir [ 60 ].

            CRA, karahindiba köklerinde, yapraklarında ve gövdelerinde bulunan en bol bileşendir. Bu, sıvı kromatografi, kütle spektrometrisi ve HPLC [ 30 ] kullanılarak karahindiba suyunun otuz fenolik bileşeninin analizi ile ortaya çıkarılmıştır . 2,3-dikaffeoiltartarik asit, güçlü bir anti-diyabetik ajan olduğu bilinen Chichorium intybus'tan elde edilen bir fenolik bileşendir [ 61 ]. CGA ve CRA, aynı aileden ( Chichorium intybus ) bitkilerden elde edilir ve kahve ikamelerinin üretimi için hammadde olarak kullanılmıştır [ 62 ]. İnülin varlığında, CRA lipid metabolizmasını iyileştirir. Gelen bir canlıdaçalışmada, hindiba özü ile beslenen ve inülinle zenginleştirilmiş bir diyetle beslenen sıçanlar, fekal lipid, kolesterol ve safra asidi atılımında önemli bir artış gösterdi, bu da hindibanın lipid metabolizmasını düzenlediğini ima etti [ 63 ]. 3.4 Karahindibada bulunan diğer mikro besinler


            Karahindiba ayrıca vitaminler (A, C, D, E ve B), inositol, lesitin ve demir, magnezyum, sodyum, kalsiyum, silikon, bakır, fosfor, çinko ve manganez gibi mineraller açısından da zengindir [ 64 ]. Bu iyonlardan bazılarının akışı, örneğin beta hücrelerindeki kalsiyum iyonları, insülin ekzositozunu uyarmaya yardımcı olabilir [ 65 ]. Sebzeler arasında karahindiba, A vitamininin kaynaklandığı beta-karoten (11.000 µg/100 g yaprak, havuçta olduğu gibi) için en zengin kaynaklardan biridir [ 66 ]. Son birkaç yılda, karahindiba, anti-romatizmal, anti-kanserojen, idrar söktürücü, müshil, hipoglisemik ve kloretik etkiler dahil olmak üzere sağlık yararları göstermiştir [ 67 ].

            Git: 4. Karahindiba ve bileşenlerinin anti-diyabetik özellikleri


            Karahindibadaki biyoaktif bileşenler, seskiterpen laktonlar, triterpenler/fitosteroller (taraxasterol), fenoller, flavonoidler ve fenolik asitler gibi bileşenlerin farmakolojik etkilerinden kaynaklanan bir dizi anti-diyabetik etki göstermiştir [ 44 , 67 ]. Metformin şu anda ilk tercih ve en çok kullanılan anti-diyabetik ilaç tedavisidir ve orijinal olarak Galega officinalis'te keşfedilen galeginden elde edilmiştir [ 68 ]. Benzer şekilde, alfa glukozidazın inhibisyonu için anti-diyabetik bir ilaç olarak kullanılan akarboz, bir bakteriden keşfedilmiştir [ 69 ].

            T2D'deki ana faktör, artan kan şekeri seviyelerine (hiperglisemi) ve daha sonra vasküler hastalıkların gelişmesine neden olabilen T2D'ye yol açan insülin sekresyonunun ve insülin duyarlılığının düzensizliğidir [ 70 ]. T2D hem salgın bir fenomen hem de büyük bir ekonomik ve sosyal yük olduğundan, birçok ülke diyabet önleyici ilaçlara daha fazla bağımlı hale geliyor [ 27 , 28 ]. Karahindiba kökü, frukto-oligosakkaritler (FOS) içeren inülin içerir. FOS karmaşık bir karbonhidrattır; alımı, gastrointestinal sistemdeki patojenleri ortadan kaldıran bifido-bakterilere fayda sağlar [ 66]. Mineral emiliminin bir sonucu olarak, FOS bağışıklık sistemini uyarır ve böylece anormal hücre büyümesini baskılar. Bu karmaşık karbonhidrat, kan şekeri seviyelerini normalleştirmeye yardımcı olabilir. Amin et al . (2015), yüksek seviyelerde su özü kullanıldığında hiperglisemiyi azaltır [ 66 ]. CGA, obezite ve iltihabı önlemek için potansiyel bir bileşik olmuştur. Aynı zamanda insülin sekresyonunu ve duyarlılığını da etkiler, bu da onu gelecekteki bir anti-diyabetik ilaç olarak kullanım için çekici bir seçenek haline getirir [ 61 , 71 ]. 4.1 Anti-hiperglisemik eylemler


            Karaciğer, kaslar ve yağ dokusu gibi birkaç anahtar dokuda ortaya çıkan insülin direnci, hipergliseminin birincil nedenidir ve T2D patogenezinde bir ayırt edici özelliktir [ 72 ]. Glikoz homeostazını etkileyen bir başka iyi bilinen mekanizma, oto-oksidasyon ve protein glikasyonu tarafından yönlendirilen oksidatif strestir [ 73 ]. Bu süreç, lipid peroksit üretiminde bir artışa neden olabilir ve bu da anti-oksidatif savunmayı [ 67 ] azaltır ve böylece β-hücre disfonksiyonunun gelişimini destekler [ 74 ]. β-hücre disfonksiyonu, proinsülinin insüline dönüşümünü olumsuz etkileyen glukotoksisite ve lipotoksisitenin bir sonucu olarak insülin sekresyonunu bozar [ 75].]. Karahindiba özleri üzerinde yapılan çalışmalar, pankreatik β-hücrelerinde insülin salınımını uyarabileceğini ve bunun sonucunda hipergliseminin etkilerine karşı koyabileceğini ortaya koydu [ 76 ].

            Hüseyin ve ark . (2004), sıçan insülinoma hücrelerinin (INS-1E hücreleri) insülin aktivitesine sahip olduğunu göstermiştir. Taraxacum officinale'nin (TO) kurutulmuş etanolik özütü (40 ug/ml) hücrelere yüksek glikoz (6.0 mM) varlığında, kontrol olarak glibenklamit (bir anti-diyabetik ilaç) kullanılarak verildi. Yazarlar, normal glukoza (3.0 mM) kıyasla INS-1E hücreleri tarafından önemli bir insülin salgısı buldular [ 76 ].

            Çalışmalar, CRA'nın pankreasta insülin sekresyonunun uyarılması nedeniyle kas hücrelerinde glukoz alımını da arttırdığını ortaya koymuştur [ 61 ]. %9.7 etanolik özün bitkisel preparatı olarak uygulanan karahindiba, obez olmayan diyabetik farelerde anti-hiperglisemik etkilere sahiptir [ 23 ]. Ayrıca, CRA ve TS, a-glukozidaz ve a-amilazı inhibe ederek nişasta gibi kompleks karbonhidratların sindirimini önler ve böylece anti-hiperglisemik etkiye daha fazla katkıda bulunur [ 44 ]. Diyabetik sıçanlarda yapılan çalışmalar, karahindibanın, β-hücrelerinin insülin salgılama aktivitesini iyileştiren glukoz plazma konsantrasyonunda bir azalmaya neden olduğunu göstermiştir [ 44 ]. 4.2 Anti-inflamatuar etki


            Seo et al . (2005), karahindiba yaprağı ekstraktının, sıçanlarda kolesistokinin kaynaklı akut pankreatite karşı koruma sağlayabilen anti-inflamatuar özelliklere sahip olduğunu göstermiştir [ 77 ]. Kolesistokinin'in çeşitli türlerde trofik etkiler gösterdiği bilinmektedir. TO, terpenoid ve taraxacin ve taraxacerin gibi acı sterol bileşenlerinin içeriğine atfedilebilen karaciğer ve safra kesesi bozukluklarını tedavi etmek için kullanılmıştır [ 77 ]. Koo ve diğerleri. (2004), TO'nun, tümör nekroz faktörü a (TNF-a) ve interlökin (IL) 1a salgılanması yoluyla insan hepatoma (HepG2) hücrelerinin apoptozisini indüklediğini, bu da merkezi sinir sistemi içinde anti-inflamatuar etkilere işaret ettiğini buldu. TS, TO'nun bir bileşenidir ve tümör hücresi canlılığında doza bağlı olarak %26 oranında azalmaya neden olduğu gösterildiğinden anti-kanserojen ve anti-tümör özelliklere sahiptir [ 78 ]. Zhang et al . (2012) TS'nin lipopolisakkarit kaynaklı makrofajlarda nitrik oksit (NO), prostaglandin E2, TNF-α, IL-1β ve IL-6'yı inhibe ettiğini göstermiştir. ve LPS'nin neden olduğu nükleer faktör κB'nin (NF-κB) sitoplazmadan çekirdeğe translokasyonunu önler. Bu sonuçlar, protein-inflamatuar gen ekspresyonunu düzenleyen NF-κB yolunu bloke ettiği gösterildiğinden, TS'nin anti-inflamatuar etkisini vurgulamaktadır.79 ]. Diğer şifalı bitkilere benzer şekilde (örneğin Bidens pilosa L , Allium sativum , Gymnema sylvestre , Citrullus colocynthis , Trigonella foenum greacum , Momordica charantia ve Ficus benghalensis ), TS β-hücre fonksiyon bozukluğunu modüle edebilir ve insülin gen ekspresyonunu artırabilir, bu da β-hücre fonksiyon bozukluğunu değiştirebilir ve insülin gen ekspresyonunu artırabilir. granüller ve β-hücre bozulmasını inhibe eder [ 80 , 81 ]. 4.3 Anti-oksidatif özellikler


            Oksidatif stres, DNA, lipidler ve proteinler gibi bileşenleri içeren hücresel hasara neden olur ve sonuçta T2D etiyolojisinde belirleyici süreç olan metabolik bir bozukluğa neden olur [ 82 ]. Tüketilen oksijenin yüzde ikisi, memelilerde reaktif oksijen türleri (ROS) olarak sonuçlanır. ROS, hidroksil radikallerini, süperoksit radikallerini, singlet oksijeni ve peroksil radikallerini içerir ve bunlar insan kanserinin çeşitli formlarına ve diğer ciddi hastalıklara katkıda bulunur [ 83 ]. Son zamanlarda, karahindiba köklerinde bulunan CGA, malondialdehit ve glutatyon gibi oksidatif stres belirteçlerini baskılayabilen güçlü bir antioksidan olarak tanımlanmıştır [ 84 - 86 ].

            Glikozun β-hücrelerinde ROS oluşturabileceği de gösterilmiştir, bu da glikozun neden olduğu oksidatif stresin bir glikoz toksisitesi mekanizması olduğu anlamına gelir [ 87 ]. ROS oluşumu süreci, oto-oksidasyon, oksidatif fosforilasyon, glikosilasyon ve glukozamin yollarını içerir [ 88 ]. Fazla ROS üretiminin hem yürütülen gibi çeşitli çalışmalardan bilinmektedir karahindiba özü tarafından sağlanan anti-oksidan savunma, gerektirir , in vitro ve in vivo olarak [ 89 ]. Karahindiba çiçekler flavonoidler, kumarik asit ve askorbik asit dahil [fenolik bileşen zengin içeriği yoluyla etkisini uygulayan potansiyel anti-oksidan kaynaklar, 67]. Yaprak özleri etkili hidrojen donörleri, hidrojen peroksit süpürücüler ve indirgeyici ajanlardır [ 90 ]. Birçok çalışma karahindibanın anti-oksidatif etkisini göstermiştir. Hagymasi et al . (2000), karahindiba yaprağı ve kökünden elde edilen özler hidrojen verici, ROS oluşumunu inhibe edici ve radikal süpürücüdür [ 91 ]. Karahindiba çiçeği ekstraktlarının yakın tarihli bir başka çalışmasında, etil asetat fraksiyonu, DNA'nın ROS'un neden olduğu hasarı önleyerek ROS'u temizledi. Oksidatif stresin önlenmesi, luteolin ve luteolin 7-O-glukozit [ 92 ] dahil olmak üzere biyoaktif bileşenlerin varlığına bağlıdır .

            Obezite, β-hücre disfonksiyonuna neden olan metabolik sendromun önemli bir yönüdür. β-hücrelerinin yeterli miktarda insülin üretememesi, plazmada bulunan yüksek seviyelerde serbest yağ asitlerine bağlanır. Bu, kas hücrelerine glikoz taşınmasının azalmasına, dolayısıyla kan plazmasındaki glikoz ve yağ seviyelerinin artmasına neden olur, sonuçta karahindibanın anti-oksidatif özelliği tarafından kontrol edilebilen hiperglisemi ve lipit oksidasyonuna neden olur [ 93 , 94 ]. Yapraklı karışık sebze özleri (karahindiba dahil) kullanılarak yüksek yağ ve kolesterol diyeti ile beslenen C57BL/6J fareleri üzerinde antioksidanın etkilerini değerlendiren bir çalışmada, karaciğer de dahil olmak üzere çeşitli organlarda lipid peroksidasyonunda önemli bir düşüş gözlemlenmiştir [ 95].]. Bunun nedeni, glutatyon peroksidaz, glutatyon redüktaz ve süperoksit dismutaz gibi yapraklı ekstraktlarda bulunan enzimler tarafından ifade edilen anti-oksidatif aktivitelerdir [ 95 ]. 4.4 T2D'de karahindiba eylem mekanizmaları


            T2D, lipid metabolizmasının, glukoz metabolizmasının ve insülin regülasyonunun uygun işlevini etkileyen birçok biyolojik sistemi etkiler. Glikoz, vücudun çoğu organı için ana enerji kaynağıdır ve β-hücreleri tarafından glikoz seviyelerini kontrol etmek için yetersiz insülin salınımı metabolik bozukluklara yol açar. Bu nedenle, karahindibanın T2D üzerindeki etkileri ve mekanizmaları için olası bir açıklama, metabolik sendromda yer alan faktörlerle (lipid metabolizması, glukoz metabolizması, protein metabolizması, α- ve β-hücre disfonksiyonu) etkileşimi olabilir [ 96 ].

            Edwin ve ark . (2008), bitki kaynaklı bileşiklerin anti-diyabetik özelliklerini gösterdiği aşağıdaki mekanizmaların altını çizmiştir:
            1. Renal glukoz reabsorpsiyonunun inhibisyonu
            2. Karbonhidrat enzimlerinin aktivitesinin azaltılması (β-galaktosidaz ve α-glukosidaz ile a-amilaz)
            3. Diyet kan şekerinin azaltılması (hepatik glikoliz ve glikojenezi uyarır)
            4. Potasyum kanal akışının inhibisyonu

            Bitki polifenolik bileşenlerinin T2D'ye karşı mekanizmaları, β-hücrelerinde ekzositozu artıran cAMP'nin uyarılmasını, insülin parçalayıcı süreçlerin inhibisyonunu, oksidatif stresin önlenmesini, β-hücrelerinin rejenerasyonunu, onarım ve hücresel hipertrofiyi ve adacıklarda hücresel çoğalmayı içerir. Langerhans [ 6 , 74 , 97 - 101 ]. Karahindiba gibi şifalı bitkilerde bulunan diğer aktif bileşenler arasında alkaloidler, glikozitler, amino asitler, terpenoidler, inorganik iyonlar, steroidler, karbonhidratlar ve galaktomannan zamkı bulunur. Bu bileşenlerin glukoz alımını ve metabolizmayı hem doğrudan hem de dolaylı olarak etkilediği gösterilmiştir [ 98 ]. 4.5 Karahindibanın sindirim, glikoliz ve Krebs döngüsü üzerindeki etkisi


            Karbonhidrat, vücudun ihtiyaç duyduğu hızlı enerjinin %80'inden fazlasını sağlayan nişasta ve sakaroz bileşenlerinden oluşur. Sindirim sırasında, α-amilaz ve α-glukosidaz dahil olmak üzere insanların ağız ve ince bağırsaklarındaki çoğu enzim, ince bağırsak duvarlarından kan dolaşımına emilen glikoz üretmek için karbonhidratların bölünmesini kolaylaştırır [ 102 ]. Glikoz seviyesini düzenlemek için TS ve CGA gibi bileşenler a-karbonhidratları inhibe edebilir. Bu inhibitör etki, özellikle diyabetik hastalarda glukoz homeostazına katkıda bulunur [ 28 ]. CGA ve TS'nin glukoz emilimini azaltma eylemleri, T2D hastalarında tokluk kan glukoz düzeyini düşürmeye yardımcı olan terapötik bir yaklaşım olabilir [ 66].]. Karahindibadaki biyoaktif bileşenlerin, biyokimyasal yolların hedef bölgelerinde, özellikle glikoz metabolizmasının dahil olduğu bölgelerde etki ettiği bilinmektedir.

            Mitokondri, Krebs döngüsü ve yağ asidi oksidasyonunun gerçekleştiği bölge oldukları için insülin direncinin başlangıcında başka bir kritik rol oynar. Disfonksiyonları, kas dokusunda yağ birikmesine ve ardından membran taşınmasında adenozin trifosfatın (ATP) azalmasına neden olabilir [ 103 ]. Karahindibadaki biyoaktif bileşenler, muhtemelen karbonhidratları sindiren belirli enzimlerin inhibisyonu yoluyla bu yolları düzenleyebilir [ 98 ]. İlgili yollar, β-hücrelerinden insülin salınımında yer alan diğer yollara ek olarak glikolitik döngü ve Krebs döngüsüdür. CGA ve CRA, glikozun glikoz-6-fosfata (G6P) fosforilasyonunu katalize eden glikolizde glukokinazı aktive edebilir [ 104 , 105].

            Glikoliz, 6 karbonlu bir glikoz molekülünün iki pirüvik asit molekülü ile sonuçlanmak üzere oksitlendiği metabolik bir yoldur. Bu glikolitik yol, esas olarak düşük oksijen durumunda kalan dokularda, örneğin düşük oksijenli kırmızı kan hücrelerine sahip dokularda enerji üretir. Katalitik reaksiyonlar, fosfofruktokinaz, heksokinaz ve piruvat kinaz dahil olmak üzere çeşitli enzimlerin hareketlerini içerir. Karahindiba gibi şifalı bitkilerden elde edilen biyoaktif bileşenlerin, heksokinaz, glukokinaz ve fosfofruktokinaz gibi enzimleri düzenlediği bilinmektedir. Bu enzimler, glikoliz süreçlerinde ve Krebs döngüsünde yer alır [ 98 ]. Çalışmalar, CGA açısından zengin bitkilerin bu önemli enzimlerin (fosfofruktokinaz, heksokinaz ve piruvat kinaz) fonksiyonel aktivitelerini iyileştirebildiğini göstermiştir [ 106 ].

            Glikoliz ve sitrik asit döngüsünde yer alan birçok enzim vardır. Bitkilerdeki bazı bileşenler bu enzimleri etkileyebilir. Bu bileşenler karahindibada da bulunur. Karahindiba, özellikle glikoliz ve dolaylı olarak Krebs döngüsünü doğrudan etkileyen yüksek bir CGA konsantrasyonuna sahiptir. TS ve CRA gibi diğer güçlü bitki bileşenlerinin de T2D tedavisiyle ilgili etkilerden sorumlu olabileceğini tahmin etmek mümkündür. Bu alanda TS ve CRA hakkında daha fazla araştırma yapılması gerekmektedir. 4.6 İnsülin salınım mekanizması sırasında karahindiba etkisi


            β-hücrelerinde insülin salınımının mekanizması, kandaki sık glikoz dalgalanmalarıyla başa çıkması gereken karmaşık bir süreçtir. Didier et al . (2008), CGA'nın sıçan karaciğerinde bir glukoz-6-fosfataz (G6P) inhibitörü olduğunu ve glukoz taşınmasını artırabileceğini, böylece ATP üretimini artırdığını ve insülin sekresyonunu uyardığını göstermiştir [ 61 ]. β hücrelerinin sitoplazmasındaki trans-Golgi ağı içinde bir araya gelen granüllerden insülin salınmadan önce iki işlem gerçekleşir: 1) ATP kapılı potasyum kanalının kapanması ve 2) voltaj kapılı kalsiyum kanalının aktivasyonu gerçekleşir [ 107 ]. Jensen ve diğerleri. (2008), insülin ekzositozunun β-hücrelerinin hücre içi ATP/ADP oranı tarafından kontrol edildiğini ve bunu glikoz metabolizmasında bir yükselmenin takip ettiğini öne sürmüştür [ 108 ]. Β-hücrelerinin K kapatılması ile geliştirilmiş, ATP / ADP oranına indükler plazma membranı depolarizasyon ATP -duyarlı kanalları. Sonuçta ortaya çıkan Ca2 + akışı , plazma membranı içinde veziküller içeren, kolayca salınabilen bir havuzun füzyonu yoluyla ensülin ihracına neden olur [ 109 ].

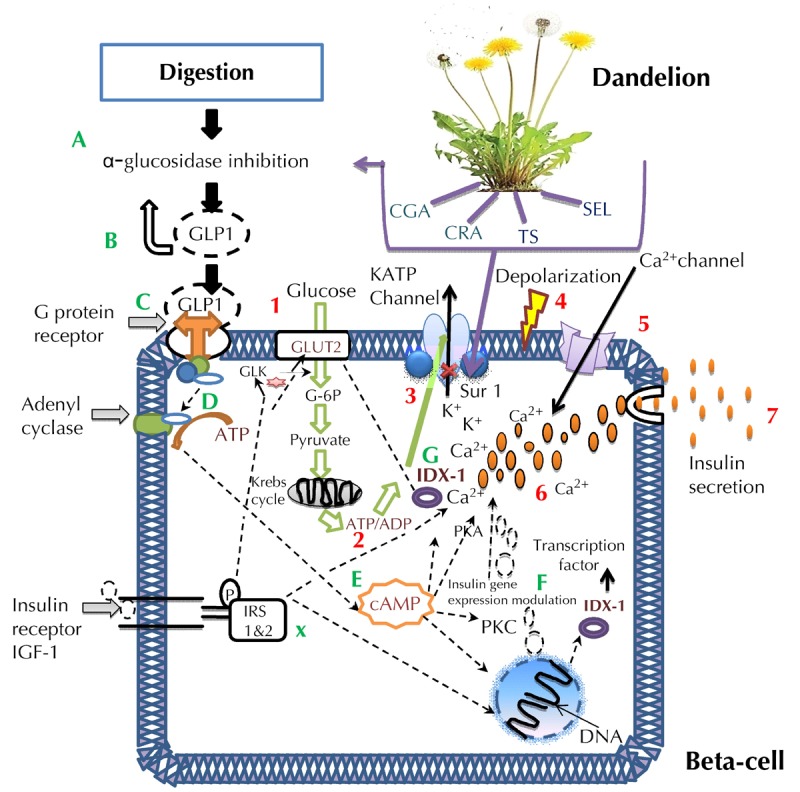
            Araştırmalar, belirli biyoaktif bitki bileşenlerinin, özellikle CRA ve CGA'nın, ATP'ye duyarlı potasyum kanalının (KATP) kapanmasına katkıda bulunan sülfonilüre bağlama bölgesi 1 (SUR1) üzerinde etki gösterebildiğini ve nihayetinde membran depolarizasyonuna yol açtığını göstermiştir. kalsiyum iyonu akışını destekler [ 61 , 81 ]. Bu mekanizma, temsil edilmektedir , Şekil​Şekil 22.


            cAMP ve insülin sekresyonunu modüle etmek için karahindiba türevli bileşiklerin potansiyel biyolojik mekanizmaları
            Diyagram, insülin salgılanması ve cAMP yolu üzerindeki karahindibadan (CGA, CRA, TS ve SEL) biyoaktif bileşenlerin potansiyel mekanizmalarını belirtir. T2D, β-hücrelerinde düşük yanıt (GLUT2, SUR1, G-protein-bağlı reseptörler ve gen ekspresyonu düzeyinde), sindirim, glikoliz ve Krebs döngüsündeki enzimatik etki dahil olmak üzere çeşitli kusurlardan kaynaklanabilir. Biyoaktif bileşikler, bir dizi işlemde doğrudan veya dolaylı olarak etki edebilir, böylece bazı T2D kusurlarını ve yanıtlarını modüle eder ve düzenler. İnsülin sekresyonunun basamakları 1 - 7 sayıları ile gösterilir , 1. ve 2. basamaklar ATP'nin nasıl üretildiğini, 2. - 5. basamaklar KATP mekanizmasını gösterir.kalsiyum iyon kanallarının kapanması ve açılması ve 5 - 7 , kalsiyum iyonlarının β-hücresi içine akışını gösteren insülin granüllerini ekzositoz yoluyla insülin salmak için tetikler. Bir için G barsaklardaki sindirim sırasında α-glukosidaz inhibisyonu aşağıdaki β-hücresi etkinliğinin çeşitli seviyelerde CGA, CRA, TS aksiyonu, ve SEL potansiyel modu gösterir. A ve B , bağırsak L-hücreleri tarafından salgılanan GLP-1'in salınımındaki yukarı regülasyonu ve ardından karahindiba bileşenleri CGA, CRA ve TS tarafından indüklenen glukoz absorpsiyonunun inhibisyonunu temsil eder. C ve DcAMP'nin PKA, PKC ve IDX-1'i aktive ettiği, insülin ve GLUT2'nin gen modülasyonunun yanı sıra bir artışla sonuçlanan E ve F adımlarını daha da aktive eden G-protein-bağlı reseptörlerin uyarılmasını ve adenil siklazın aktivasyonunu gösterir. sonunda insülin salınımını kolaylaştıran kalsiyum akışında. X , IDX 1 faktörü, GLUT2, glukokinaz ve endoplazmik retikulum Ca iyonlarının düzenlenmesi yoluyla insülin salgılanmasını indükleyen karahindiba türevli bileşikler tarafından insülin reseptörünün modülasyonunu temsil eder.

            Ayrıca bitki bileşenleri, kolesistokinin ve glukoz ile uyarılan insülin salınımını indükleyerek β-hücrelerinde ikinci bir haberci olarak görev yapan siklik adenosin monofosfatın (cAMP) biyosentezini uyarabilir ve artırabilir [ 6 ]. Bu nedenle, TS, CGA, CRA ve tıbbi bitkilerin diğer bileşenlerinden hazırlanan karahindiba türevli bileşiklerin insülin gen ekspresyonunu modüle edebilmesi, granüllerden insülin salgılanmasını teşvik edebilmesi ve β hücrelerinin bozulmasını önleyebilmesi mümkündür [ 81]. ].

            Son olarak, karahindiba, kalsiyum dönüşümünü ve mobilizasyonu muhtemelen etkileyebilecek, Ca2 + plazma seviyelerini ve triaçilgliserol (TAG) üretimini ve protein kinazın (PKC) izoformlarını aktive eden kalsiyum gibi iyonlar açısından çok zengindir . Karahindiba türevli bileşiklerin PKA ve PKC üzerindeki etkisi ayrıca yüksek Ca2 + seviyelerinin sağlanmasına yardımcı olur . En önemlisi, bu yol insülin salınımı üzerindeki etkiyi artırır [ 65 , 110 ]. 4.7 β-hücresi gen ekspresyonunun düzenlenmesinde karahindiba bileşenlerinin mekanizması


            Kahveye benzer şekilde, karahindiba kökleri ve çiçekleri, β hücrelerinin işlevini düzenleyen CGA gibi biyoaktif antioksidan bileşenleri içerir [ 111 ]. İnkretin hormonu glukagon benzeri peptit-1 (GLP-1), CGA tarafından glikoz absorpsiyonunun inhibisyonunun bir sonucu olarak bağırsak L-hücreleri tarafından salgılanır [ 111 ]. Pankreas adacıkları dört hücreden oluşur: insülin salgılayan β-hücresi, glukagon salgılayan α-hücresi, somatostatin salgılayan δ-hücresi ve polipeptit salgılayan F-hücresi [ 112 ]. CGA'nın etkisinden kaynaklanan GLP-1 üretimi, β-hücresinden glukoza bağımlı insülin salgılanmasını modüle etmeye yardımcı olur. Sonunda, cAMP'yi aktive eden membran reseptörlerinin bir uyarımı vardır [ 113]. GLP-1 ayrıca, cAMP yolunun artan aktivitesinden kaynaklanan homeo alan adacık/duodenum homeobox-1'in (IDX-1) aktivitelerini yukarı doğru düzenleyerek gen ekspresyonunu da arttırır. IDX-1, β-hücre farklılaşması ve işlevinden, somatostatinin düzenlenmesinden ve pankreas gelişiminden sorumlu bir ana düzenleyicidir [ 114 ].

            IDX-1 bir transkripsiyon faktörüdür ve insülin gen transkripsiyonunda, en temel olarak glukoz taşıyıcı 2'nin (GLUT-2) ve β-hücrelerinde glukoz yanıtını başlatan glukokinazın transkripsiyonunda önemli bir rol oynar [ 111 , 114 ]. İnsülin gen ekspresyonunu ve β-hücre fonksiyonunu düzenleyen diğer β-hücresi transkripsiyon faktörleri arasında PPAR, Nkx2-2, Nkx6.1, pdx1, Beta2, Pax6 ve Foxa2 yer alır [ 115 ]. Üç peroksizom proliferatörü ile aktive olan reseptör (PPAR-y, -δ ve -α) gibi transkripsiyon faktörleri, karaciğer, bağırsak ve yağ dokusunda karbonhidrat ve lipid metabolizmasından sorumlu olan genlerin ekspresyonunu arttırır [ 116 ]. Ayrıca, Christensen ve arkadaşlarının çalışması. (2009), karahindiba sapları, çiçekleri ve yaprakları gibi şifalı bitkilerden elde edilen ekstraktların bileşenlerinin PPAR-y'yi aktive ettiğini ortaya koymuştur. Tüm nükleer reseptörler gibi, PPAR'lar da bir DNA bağlama alanına (DBD) ve bir ligand bağlama alanına (LBD) sahiptir. Aktive edildiklerinde, ko-represörlerinden salınacak retinoid-X-reseptörü (RXR) olarak adlandırılan başka bir reseptör ile dimerler oluştururlar [ 117 ]. PPAR/RXR kompleksi, DNA bağlama alanı yoluyla çekirdekteki DNA'ya bağlanır ve glukoz ve lipid metabolizmasının kontrolünde yer alan spesifik genlerin transkripsiyonuna neden olur [ 118 ]. Tiazolidindion olarak da bilinen glitazonlar, anti-diyabetik aktivitelere sahiptir ve PPAR-y'yi aktive eder [ 119]. PPAR-y iki formda bulunur (PPAR-y-1 ve PPAR-y-2), PPAR-y-2 genlerin düzenlenmesine ve insülin duyarlılığına katkıda bulunur [ 120 ]. Bir in-vivo deneyde, Li ve ark . (2009), CGA'nın, PPAR-a ile etkileşim yoluyla hepatik mRNA ekspresyonunu önemli ölçüde arttırdığını göstermiştir. Dolayısıyla CGA'nın PPAR-a'yı [ 121 ] aktive etmesi mümkündür . Ayrıca, CGA'nın varlığı GLP-1 üretimini uyarabilir, β-hücre fonksiyon bozukluğunu tersine çevirebilir ve böylece T2D'nin tedavisine yardımcı olabilir [ 122 ]. 4.8 Karahindibanın lipid metabolizmasındaki etki mekanizması


            T2D, β-hücre disfonksiyonundan ve obezite ve alkole bağlı olmayan yağlı karaciğer hastalığı (NAFLD) gibi diğer metabolik bozukluklardan kaynaklanır [ 123 ]. Alkolün aşırı tüketimi veya yetersiz metabolizması, alkolik yağlı karaciğer hastalığına (AFLD) yol açarken, aşırı karbonhidrat veya şeker tüketimi, karaciğerde anormal bir lipid oluşumu olan NAFLD'ye yol açar [ 124 , 125 ]. Bu süreç, aşırı şeker (fruktoz) yoluyla karaciğerde yağ veya trigliseride biriken serbest yağ asitlerinden lipogeneze yol açabilir ve insülin direncine, bozulmuş glukoz metabolizmasına ve inflamatuar yanıta neden olabilir [ 125 ].

            Farelerde, karahindiba yaprağı ekstraktının, muhtemelen karaciğerde adenosin monofosfatla aktive olan protein kinazın (AMPK) yükselmesi yoluyla serum glikoz, kolesterol ve trigliserit düzeylerini düşürdüğü, lipid birikiminde önemli bir düşüş ve insülin duyarlılığında iyileşme olduğu gösterilmiştir. [ 126 ]. Karahindiba, diyabetin güvenli tedavisini ve kontrolünü sağlayan potansiyel biyoaktif bileşenleri (TS ve CGA) içerir. Birkaç faydalı özelliği vardır; anti-diyabetik, anti-oksidatif ve anti-inflamatuardır. Bazı çalışmalarda, karahindiba bileşenlerinin karaciğer hasarında oksidatif stresi inhibe ederek, yüksek kolesterolü azaltarak ve streptozotosin kaynaklı diyabeti tersine çevirerek etki gösterdiği gösterilmiştir [ 127].]. Oksidatif stres, T2D'nin ana belirteci olduğundan, CGA'nın (karahindibadan türetilmiştir) oldukça anti-oksidatif olması, ROS süpürücü enzimlerin, malondialdehit ve glutatyon üretimini artırması ve karaciğerde oksidatif stresi inhibe etmesi ilginçtir. Karahindibanın bu özelliği, lipid peroksidasyonunun azaltılabileceği yağlı karaciğer hastalığı senaryosunda faydalıdır [ 85 , 86 ].

            Cho et al . (2010), CGA'nın yüksek yağlı diyetle indüklenen obez farelerde vücut yağını pozitif olarak değiştirdiğini göstermiştir [ 128 ]. Bu, CGA'nın, yağ asidi ve kolesterol biyosentezinin aşağı regülasyonu yoluyla gözlemlenebilen, böylece β-hücrelerinin serbest yağ asitlerine aşırı maruz kalma riskini azaltan ve böylece yağlanma ve insülin direnci etkilerine karşı koyan anti-obezite özelliklerine sahip olduğu anlamına gelir [ 128 ] . Serbest yağ asitlerinin yüksek konsantrasyonlarının β-hücreleri için toksik olduğuna dair önemli kanıtlar vardır [ 129 ]. Glikoz ile uyarılan insülin sekresyonunda azalmaya β-hücrelerinin potansiyel toksisitesi, bozulmuş insülin geni ekspresyonu, β-hücresi işlev bozukluğu, ve artan hücre ölümü [ 15]. Prentki ve Corkey (1996), fizyolojik glikoz konsantrasyonlarının mevcudiyetinde, aşırı yağ asitlerinin mitokondriyal β-oksidasyon ile kolayca uzaklaştırıldığını varsaydılar [ 130 ]. Bununla birlikte, hem yağ asitleri hem de glikoz yükseldiğinde, yağ asidi esterleşmesinden kaynaklanan ve β-hücre fonksiyonunu kademeli olarak bozan bir metabolit birikimi olur [ 130 ]. Karahindiba ekstraktının, AMP ve AMPK fosforilasyonunu aktive ederek hepatik lipid birikimini azaltabildiği, dolayısıyla NAFLD'ye ve nihayetinde hepatik steatoz (yağlı karaciğer hastalığı) karşı koruduğu da gösterilmiştir [ 126 ].

            Karaciğer, açlık ve tokluk durumlarında kan şekeri konsantrasyonunun korunmasından sorumludur. İnsülinin etkisi kaybolduğunda, karaciğer glikojenolizi başlatır ve hepatik glukoz üretimini arttırır [ 131 ]. İnsülin direncinin erken bir belirtisi, insüline duyarlı dokularda trigliserit depolanması ve lipolizdeki anormalliklerin sonucudur [ 14 ]. Obezite, T2D ve inflamasyon arasında bir bağlantı vardır. Farelerin adipoz dokularındaki TNF-a düzenlemesi çalışmaları, her ikisinin de insülin direnci riskini arttırdığı gösterilmiş olan obezite ile TNF-a konsantrasyonu arasında bir korelasyon bulmuştur [ 132 ]. Aşırı serbest yağ asidinin hepatositler için toksik olduğu ve insülin direncine katkıda bulunduğu gösterilmiştir.133 ]. Sindirim, karbonhidrat metabolizması, insülin salınımı ve β-hücre fonksiyonu üzerindeki etkisiyle birleştiğinde, karahindiba ekstraktlarının lipid metabolizması üzerindeki, özellikle karaciğer ve yağ dokusu üzerindeki etkisi, T2D modülasyonunu olumlu yönde etkileyebilir [ 67 , 133 ]. 4.9 Karahindibanın G-protein-bağlı reseptörlerdeki etki mekanizmaları ve insülin işlevi


            G-protein-bağlı reseptörler (GPCR'ler), insülin ve glukagon regülasyonunu iyileştirmek üzere tasarlanmış bir dizi sentetik ve bitki türevi farmasötik için genellikle temel hedeflerdir [ 134 ]. CRA, CGA ve TS, membran reseptörlerini uyarabilir ve ATP ve cAMP oluşumuna aracılık edebilir [ 61 ]. GPCR'lerin çoğu, adacık fonksiyonunun düzenlenmesinde yer alır ve çeşitli iyonlar, yağ asitleri ve amino asitler içerir [ 135 ].

            G-proteininin a-alt birimi, aktif olmadığında guanozin 5'-difosfata (GDP) ve aktive edildiğinde guanozin trifosfata (GTP) bağlanır. GPCR, sinyal molekülleri ile bağlanma yoluyla aktive edildiğinde, karahindibadan (CRA, CGA, TS) biyoaktif bileşenler gibi ligandlar farklı hücre fonksiyonlarını etkiler [ 136].]. Ligandlar, serbest GTP'den bir fosfat grubunun kaybından ve reseptör üzerinde GDP'nin GTP'ye dönüştürülmesinden kaynaklanan, GDP ve GTP arasında bir a-alt birim fosfat değişimine yol açan konformasyonel değişiklikleri yayan GPCR'ye bağlanır. Sonuç olarak, Gα-GTP ve Gβγ alt birimleri hem reseptörden hem de birbirinden ayrışır ve adenil siklaz gibi hedef proteinleri düzenler. Ayrıca, GPCR'den gelen sinyal, aktive edildiğinde Gi uyarıcı fosfolipaz c ile uyarıcı G'ler ve engelleyici Gi aracılığıyla iletilebilir. Bu, membrandaki fosfatidilinositolü parçalayarak inositol-1, 4,5-trifosfat (IP3) ve TAG'yi serbest bırakır [ 137]. cAMP, ATP kullanılarak adenil siklazın uyarılmasından oluşturulur. cAMP'nin eylemlerinin, çeşitli proteinlerin aktivitesini düzenleyen protein fosforilasyonuna yol açan ve PKA adı verilen başka bir enzimi uyaran bitki bileşenleri tarafından aktive edildiği bilinmektedir [ 6 , 138 ]. IP3 , endoplazmik retikulumdan kaynaklanan sitozolik Ca2 +'ı arttırır [ 137 ]. PKA, sitoplazmada farklı proteinlerin ve enzimlerin fosforilasyonuna yardımcı olur ve belirli genlerin transkripsiyonuna katılır [ 139 ]. En sonunda, bu işlem, insülin ekzositozda sinyallemesini [aracılık Hücrelere ve dokulara glukoz taşınmasını kolaylaştırır 6]. Bu nedenle, karahindibanın bazı bileşenleri (CRA, TS ve CGA), G-protein-bağlı reseptörlerle etkileşime girmek ve böylece β-hücresinde insülin salgılanmasına yol açabilen, hiperglisemiyi düzenleyebilen ve hiperglisemiyi düzenleyebilen çeşitli aktiviteleri uyarmak için uygulanabilir. T2D'nin önlenmesi ve tedavisinde yardım [ 140 ]. 4.10 Glikoz taşınması ve karahindiba eylemi


            İnsülin, hücre içi depolama veziküllerinden plazma membranına ve enine tübüllere GLUT4 translokasyonunu artırarak iskelet glukoz alımını uyarır. Didier et al . (2008), CGA'nın kas hücrelerinde glikoz taşınmasını ve β hücrelerinde insülin salgılanmasını uyardığını göstermiştir. Ayrıca, insülin kaslarda aktiviteyi başlatır ve insülin reseptörlerinin bağlanmasına ve ardından otofosforilasyona yol açar. Bu süreç ayrıca bir dizi fosforilasyonu ve insülin sinyalleşmesine aracılık eden protein-protein etkileşimlerini indükler [ 141 ]. Mc Culloch ve arkadaşlarına göre . (2011), glukoz akışı spesifik insülinden bağımsız GLUT membran taşıyıcı proteinler tarafından düzenlenir (insanda GLUT1 ve kemirgen β-hücrelerinde GLUT2). Michaelis sabiti (K mGLUT1 ve GLUT2'nin ) değerleri çok yüksektir, bu da onların yalnızca yüksek hücre dışı glikozda aktif olduklarını gösterir. GLUT 1, GLUT3 ve GLUT4, yüksek afiniteli bağlayıcı proteinlerdir, GLUT2 ise düşük afiniteli bağlayıcı bir proteindir. CGA'nın bağırsakta glikoz taşınmasını geciktirdiği ve plazma GLP-1 ve GIP konsantrasyonundaki değişiklikleri başlattığı bilinmektedir. Bu özellikler, aşırı glikozun GLUT4 tarafından kas hücrelerine taşınmasını azaltarak ve insülin gen ekspresyonunun modülasyonunu uyararak T2D'nin kontrol edilmesine yardımcı olabilir [ 111 , 142 ]. Memeli hücre tipleri, örneğin oksidatif fosforilasyonun ve ozmotik stresin inhibisyonu gibi metabolik strese maruz kaldığında, AMPK'nin aracılık ettiği GLUT1 tarafından glikoz alımında bir artış olur [ 143 ].

            Son olarak, CRA ayrıca karaciğerde glikojenolizi ve glukoneogenezi katalize etmede rol oynayan bir glukoz-6-fosfataz (Glc-6-pase) inhibitörüdür. CRA, Glc-6-P taşıyıcısını (T1) ve T1 ile fosfataz taşıyıcısı arasındaki etkileşimi engelleyen 2-hidroksi-5-nitrobenzaldehidi (HNB) bağlar. Bu, T2D'de anormal derecede yüksek glikoz üretim oranlarının düzenlenmesinde faydalıdır [ 142 ]. GLUT4, iskelet kasları, kalp ve beyaz ve kahverengi yağ dokusu tarafından insülin ile uyarılan glukoz alımına aracılık eder ve böylece hiperinsülinemik koşullar altında kaslara glukoz alımını arttırır [ 143 ]. CRA'nın kaslarda glukoz alımı üzerindeki etkisi, insülin duyarlılığını artıran AMPK'nin aktivasyonu yoluyla ortaya konabilir [ 61 ]. 4.11 Karahindibanın kas hücreleri tarafından glikoz alımındaki etki mekanizması


            Touch (2008) tarafından yapılan çalışma, CRA ve CGA'nın, glukozu kas hücrelerine taşımak için GLUT4'ü yer değiştiren AMPK yolunun aktivasyonu nedeniyle L6 hücrelerinde (kültürlü kas hücreleri) insülin kaynaklı glukoz alımını önemli ölçüde arttırdığını göstermiştir [ 61 ]. Kas hücre zarı, iki α ve β alt biriminden oluşan insülin reseptörlerine sahiptir. α alt birimleri hücre zarı içinde haricidir ve insülin bağlama bölgelerini içerirken, β alt birimleri dahilidir ve tirozin alanlarından oluşur [ 136].]. α alt birimleri insüline bağlandığında, β alt birimleri fosforile olur ve insülin reseptör substratını (IRS-1) başlatan tirozin kinaz enzimini ve fosfatidilinositol 3-kinaz (PI3K), AMPK ve mitojenle aktive olan protein gibi aşağı akış yollarını aktive eder. kinaz (MAPK) [ 144 ]. Bu süreç, GLUT4'ün hücre zarına translokasyonunu arttırır, bu da glikozu kas hücre zarına taşır.

            Kas hücreleri ve yağ dokuları da PPAR'ları içerir [ 116 ]. Karahindiba türevli bileşiklerin işlevi, PPAR'ları önemli ölçüde aktive edebilir [ 120 ]. Bu aktivasyon, GLUT4 reseptörünü uyaran kas insülin duyarlılığını geliştirir ve kas ve yağ dokusunda insülin ile uyarılan glukoz alımından sorumlu GLUT4'ün salınımını başlatır [ 145 , 146 ]. Kanaujia et al . (2010), Capparis moonii'den hazırlanan bileşiklerin glikoz alım etkisiönemli insülin reseptörü (IR) ve insülin reseptörü substrat 1 (IRS-1) fosforilasyonu, GLUT4 ve PI3-kinaz mRNA ekspresyonu ile ilişkilidir. Bu, karahindiba bileşenlerinin IRS-1, PI3K ve GLUT4 mRNA ekspresyonunun fosforilasyonunu modüle edebileceğini ve dolayısıyla kas hücrelerinde glukoz alımını faydalı bir şekilde etkileyebileceğini düşündürmektedir [ 147 ].

            Git: 5. Karahindiba toksisitesi


            Bileşenlerinde toksin ve alkaloid bulunmamasının bir sonucu olarak, karahindiba düşük toksisiteye sahiptir [ 77 ]. Ağızdan kurutulmuş karahindiba bitkisi (3 ila 6 g/kg vücut) ile tedavi edilen tavşanlar ve karahindiba etanoik özleri ile tedavi edilen fareler ile tavşanlar, fareler ve sıçanlar üzerinde yapılan çalışmalar, önemli veya görünür hiçbir toksisite belirtisi göstermedi [ 148 ]. Bununla birlikte, alerjik reaksiyonlar mümkündür ve hassas kişilerde ortaya çıkabilir. Taraxinik asit ve seskiterpen laktonun karahindibadaki en alerjik bileşenler olduğu ve hassas kişilerde alerjik kontakt dermatite ve reaksiyonlara neden olduğu bulunmuştur [ 149].]. İlaca dirençli insan melanom hücrelerinde karahindiba kökü ekstresinin etkinliğini değerlendiren bir çalışmada, kök ekstresinin normal insan hücreleri için toksik olmadığı (insan melanom hücreleri için toksik iken) ortaya çıktı [ 150 ].

            Tanınmış doktorlar, Avrupa Komisyonu ve İngiliz Bitkisel Farmakopesi, karahindiba için aşağıdaki doz aralığını tavsiye etti:
            • Taze yapraklar günde 4-10 gr
            • Kuru yapraklar günde 4-10 gr
            • 2-5 ml yaprak tentürü, günde üç kez
            • Taze yaprak suyu, günde iki kez 1 çay kaşığı,
            • Günde 1-2 çay kaşığı sıvı özütü
            • Taze kökler günde 2-8 gr
            • Günde dört kez 250-1000 mg kuru toz özü [ 151 ]

            Bu doz önerileri ilkel olmasına rağmen, geleneksel tıbbın ulaşılmaz olduğu durumlarda alternatif, erişilebilir ve uygun fiyatlı tedaviler sağlayarak popülasyonları güçlendirir. Bununla birlikte, karahindiba türevli bileşikler, T2D tedavisinde büyük umut vaat ediyor. Özellikle biyoaktif bileşenlerinin izolasyonu, farmasötik tedaviler ve alternatif ilaçlar olarak karahindiba türevli bileşiklerin farmakokinetik ve farmakodinamik profillerinin araştırılması ve standardizasyonu ve etkilerinin in vitro , in-vivo yoluyla kapsamlı araştırılması ile ilgili olarak daha fazla araştırma yapılması gerekmektedir. ve klinik araştırma.

            Git: 6. Sonuçlar


            Bitki bazlı tıp, T2D yönetiminde çok faydalıdır. Batı tıbbından kaynaklanan terapiler maliyetlidir ve özellikle daha az gelişmiş ülkelerdekiler olmak üzere dünya nüfusunun çoğunluğu için yetersiz erişilebilirliğe sahiptir [ 5 ]. Karahindiba, anti-hiperglisemik, anti-oksidatif ve anti-inflamatuar özellikleri nedeniyle önemli bir anti-diyabetik bitki olarak kabul edilmiştir [ 44].]. Bunun nedeni, polifenolikler, seskiterpenler, triterpenler ve fitosteroller dahil olmak üzere karahindibada bulunan çeşitli biyoaktif bileşenlerdir. Karahindibanın en önemli ve kapsamlı olarak incelenen biyoaktif bileşenleri klorojenik asit (CGA), hindiba asidi (CRA), taraxasterol (TS) ve seskiterpen laktonlardır (SEL). Bu bileşenler, diyabetin düzenlenmesi için anti-diyabetik farmasötikler ve nutrasötikler olarak büyük potansiyele sahiptir. Ayrıca anti-diyabetik fonksiyonel gıdalarda kullanım potansiyeline sahiptirler. Bölümümüzde elde edilen yeni, yayınlanmamış veriler, TS'nin T2D'nin en güçlü düzenleyicisi olabileceğini göstermektedir [ 33 , 152 ].

            Farklı bitkileri anti-diyabetik etkileri açısından taramak için bazı araştırmalar yapılmıştır. Daha fazla araştırma, tıbbi bitkilerden elde edilen daha uygun maliyetli ve daha etkili diyabet tedavileri geliştirmeyi mümkün kılabilir [ 101 ]. Bununla birlikte, karahindiba biyoaktif bileşenlerinin etkilerini ve etki mekanizmalarını doğrulamak için in vitro ve in vivo bazı çalışmalar yapılmıştır . Laboratuvar ortamındaklonal β-hücre dizileri (INS-1E), a-hücre dizileri ve insan iskelet hücre dizileri üzerinde yapılan çalışmalar, bitkinin spesifik biyoaktif bileşenlerini ve diyabetteki ilgili etki mekanizmalarını tanımlamaya yardımcı olur. Bu nedenle, T2D'nin dünyanın sosyal ve ekonomik yükü üzerindeki etkisini kesinlikle azaltabilen bu araştırmadan diyabet tedavisini iyileştirmek için yeni bilgiler üretilebilir.

            Bununla birlikte, karahindiba bileşenlerinin insan klinik denemelerindeki etkileri hakkında daha fazla araştırmaya ihtiyaç vardır. İnsan diyabetik hastaları kullanan çalışmalar, T2D'ye karşı kullanım için karahindiba bileşenlerinin gücünü ve canlılığını kolayca belirleyecektir. Bu bileşenlerin insanlarda biyoyararlanımı ve metabolizması hakkında da daha fazla araştırma gereklidir. Bu alandaki araştırmalar, karahindiba türevli bileşiklerin ilaç olarak daha da geliştirilmesinin önünü açacak ve tedaviye ihtiyacı olanlara şu anda mevcut olmayan daha kapsamlı bilgiler sağlayacaktır.

            Git: Açıklamalar


            Yazarlar herhangi bir çıkar çatışması bildirmemişlerdir.

            Git: Referanslar

            1. Whiting DR, Guariguata L, Weil C, Shaw J. IDF diyabet atlası: 2011 ve 2030 için diyabet prevalansının küresel tahminleri. Diabetes Res Clin Pract. 2011; 94 (3):311–210. [ PubMed ] [ Google Akademik ]
            2. DSÖ geleneksel tıp stratejisi. Dünya Sağlık Örgütü; Cenevre: 2002. [ Google Akademik ]
            3. Kalny P, Fijałek Z, Daszczuk A, Ostapczuk P. Cilalı bitkilerde seçilmiş mikro elementlerin belirlenmesi ve infüzyonları. Bilim Toplam Çevre. 2007; 381 (1-3):99–104. [ PubMed ] [ Google Akademik ]
            4. Guariguata L, Whiting DR, Hambleton I, Beagley J, Linnenkamp U, Shaw JE. 2013 için küresel diyabet prevalansı tahminleri ve 2035 için projeksiyonlar. Diabetes Res Clin Pract. 2014; 103 (2):137–149. [ PubMed ] [ Google Akademik ]
            5. Din N. Douala Kasabası (Kamerun) Avrupa J Med Tesislerinde diyabet tedavisinde kullanılan bitkilerin envanteri ve tanımlanması . 2011; 1 (3):60-73. [ Google Akademik ]
            6. Marles RJ, Farnsworth NR. Antidiyabetik bitkiler ve aktif bileşenleri. Bitkisel ilaç. 1995; 2 (2):137–189. [ PubMed ] [ Google Akademik ]
            7. Mutalik S, Sulochana B, Chetana M, Udupa N, Uma Devi P. Dianex'in bir antidiyabetik bitkisel preparatının akut ve subakut toksisitesi üzerine ön çalışmalar. Hint J Exp Biol. 2003; 41 (4):316–320. [ PubMed ] [ Google Akademik ]
            8. Kemper KJ. Karahindiba (Taraxacum Officinalis), Longwood bitkisel görev gücü. 1999. http://longwoodherbal.org/dandelion/dandelion.pdf .
            9. Malviya N, Jain S, Malviya S. Tıbbi bitkilerin antidiyabetik potansiyeli. Acta Pol Ecz. 2010; 67 (2):113–118. [ PubMed ] [ Google Akademik ]
            10. Fabrikatör DS, Farnsworth NR. Geleneksel tıpta ilaç keşfi için kullanılan bitkilerin değeri. Çevre Sağlığı Perspektifi. 2001; 109 (3):69-75. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            11. Abdul-Ghani MA, Jenkinson CP, Richardson DK, Tripathy D, DeFronzo RA. Bozulmuş açlık glikozu ve bozulmuş glikoz toleransı olan kişilerde insülin salgılanması ve etkisi: Gaziler İdaresi Genetik Epidemiyoloji Çalışmasının sonuçları. Şeker hastalığı. 2006; 55 (5):1430–1435. [ PubMed ] [ Google Akademik ]
            12. Scheen AJ. Tip 2 diyabetin patofizyolojisi. Acta Clin Belg. 2003; 58 (6):335–341. [ PubMed ] [ Google Akademik ]
            13. Kahn BB. Tip 2 diyabet: insülin sekresyonu insülin direncini telafi edemediğinde. Hücre. 1998; 92 (5):593–596. [ PubMed ] [ Google Akademik ]
            14. Lewis GF, Carpentier A, Adeli K, Giacca A. İnsülin direnci ve tip 2 diyabetin patogenezinde düzensiz yağ depolama ve mobilizasyon. Endocr Rev. 2014; 23 (10):201–229. [ PubMed ] [ Google Akademik ]
            15. McGarry JD, Dobbins RL. Yağ asitleri, lipotoksisite ve insülin sekresyonu. diyabetoloji. 1999; 42 (2):128–138. [ PubMed ] [ Google Akademik ]
            16. Tateya S, Kim F, Tamori Y. Obezite kaynaklı inflamasyon ve insülin direncinde son gelişmeler. Ön Endokrinol (Lozan) 2013; 4 :93-94. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            17. Etgen GJ, Wilson CM, Jensen J, Cushman SW, Ivy JL. Obez Zucker sıçanının iskelet kasında glikoz taşınması ve hücre yüzeyi GLUT-4 proteini. J Physiol'um. 1996; 271 (2 Puan 1):294–301. [ PubMed ] [ Google Akademik ]
            18. Honek A, Martinkova Z, Saska P. Karahindiba (Taraxacum agg.) tohumlarının büyüklüğü, taksonomik bağlantısı ve coğrafi kökeninin yer böcekleri (Carabidae, Coleoptera) tarafından yapılan predasyona etkisi Basic Appl Ecol. 2011; 12 (1):89–96. [ Google Akademik ]
            19. Brock MT. Yerli bir karahindiba türü olan Taraxacum ceratophorum'un (Asteraceae) egzotik türdeş T. officinale tarafından genetik asimilasyon potansiyeli. Ben J Bot'um. 2004; 91 (5):656-663. [ PubMed ] [ Google Akademik ]
            20. Honek A, Martinkova Z, Saska P, Koprdova S. Karahindiba (Taraxacum agg.) bitkilerinin kurulmasında dağıtım sonrası tohum ve fide predasyonunun rolü. Agric Ecosyst Environ. 2009; 134 (2):126–135. [ Google Akademik ]
            21. Mingarro DM, Plaza A, Galan A, Vicente JA, Martinez MP, Acero N. Beş Taraxacum türünün in vitro ve in vivo antioksidan ve antiproliferatif aktivite üzerindeki etkisi. Gıda Fonksiyonu. 2015; 6 (8):2787–2793. [ PubMed ] [ Google Akademik ]
            22. Kirschner J, Zaveska Drabkova L, Stepanek J, Uhlemann I. Eşeyli üreyen türlerin nrDNA'sı temelinde Taraxacum evriminin (Compositae-Cichorieae) daha iyi anlaşılmasına doğru. Bitki Sist Evol. 2014; 301 (4):1135–1156. [ Google Akademik ]
            23. Petlevski R, Hadzija M, Slijepcevic M, Juretic D, Petrik J. Bitki karışımı özü P-9801091 ile kısa süreli tedavide NOD farelerinin karaciğerindeki Glutatyon S-transferazları ve malondialdehit. Fitoter Araş. 2003; 17 (4):311–314. [ PubMed ] [ Google Akademik ]
            24. Beguin P, Nagashima K, Gonoi T, Shibasaki T, Takahashi K, Kashima Y, Ozaki N, Geering K, Iwanaga T, Seino S. Küçük G-protein kir/Gem tarafından hücre yüzeyinde Ca2+ kanal ifadesinin düzenlenmesi . Doğa. 2001; 411 (6838):701–706. [ PubMed ] [ Google Akademik ]
            25. Lee S. Taraxacum coreanum'dan Fitokimyasal Bileşenlerin İzolasyonu ve Tanımlanması. J Korean Soc Appl Biol Chem. 2011; 54 (1):73–78. [ Google Akademik ]
            26. Escudero NL, de Arellano ML, Fernandez S, Albarracin G, Mucciarelli S. Taraxacum officinale gıda kaynağı olarak. Bitki Besinleri Hum Nutr. 2003; 58 (3):1–10. [ Google Akademik ]
            27. Alarcon-Aguilara F, Roman-Ramos R, Perez-Gutierrez S, Aguilar-Contreras A, Contreras-Weber C, Flores-Saenz J. Antidiyabetik olarak kullanılan bitkilerin anti-hiperglisemik etkisinin incelenmesi. J Etnofarmakol. 1998; 61 (2):101–110. [ PubMed ] [ Google Akademik ]
            28. Onal S, Timur S, Okutucu B, Zihnioglu F. Bazı güçlü antidiyabetik şifalı bitkilerin sulu ekstraktları ile alfa-glukosidazın inhibisyonu. Biochem Biotechnol'u Hazırlayın. 2005; 35 (1):29–36. [ PubMed ] [ Google Akademik ]
            29. Khoo HE, Prasad KN, Kong KW, Jiang Y, İsmail A. Karotenoidler ve izomerleri: meyve ve sebzelerde renk pigmentleri. Moleküller. 2011; 16 (2):1710–1738. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            30. Schütz K, Kammerer DR, Carle R, Schieber A. Karahindiba (Taraxacum officinale WEB. ex WIGG.) kökü ve bitkisinde fenolik asitlerin ve flavonoidlerin yüksek performanslı sıvı kromatografisi/elektrosprey iyonizasyon kütle spektrometrisi ile karakterizasyonu. Hızlı Komün Kitle Spektromu. 2005; 19 (2):179–186. [ PubMed ] [ Google Akademik ]
            31. Kenny O, Smyth TJ, Hewage CM, Brunton NP. Karahindiba (Taraxacum officinale) kökünden elde edilen antioksidan fraksiyonatlardaki klorojenik asit türevlerinin kantitatif UPLC-MS/MS analizi. Int J Gıda Bilimi Tekn. 2015; 50 (3):766-773. [ Google Akademik ]
            32. Fraisse D, Felgines C, Texier O, Lamaison J. Kafeoil türevleri: Asteraceae familyasının bazı yabani bitkilerinin başlıca antioksidan bileşikleri. Gıda Nutr Sci. 2011; 2011 :181–192. [ Google Akademik ]
            33. Williams C, Goldstone F, Greenham J. Taraxacum officinale'nin farklı dokularından ve tıbbi preparatlarından flavonoidler, sinnamik asitler ve kumarinler. Fitokimya. 1996; 42 (1):121–127. [ PubMed ] [ Google Akademik ]
            34. Westerman L, Roddick JG. Taraxacum officinale Weber'in yapraklarındaki sterol seviyelerindeki yıllık değişim. Bitki Fizyol. 1981; 68 (4):872-875. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            35. Roberfroid MB. Fonksiyonel gıdalardaki kavramlar: inülin ve oligofruktoz durumu. J Nutr. 1999; 129 (7 Ek):1398S–1401S. [ PubMed ] [ Google Akademik ]
            36. Choi UK, Lee OH, Yim JH, Cho CW, Rhee YK, Lim SI, Kim YC. Karahindiba (Taraxacum officinale) kökü ve yaprağının kolesterolle beslenen tavşanlarda hipolipidemik ve antioksidan etkileri. Int J Mol Sci. 2010; 11 (1):67–78. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            37. Arpadjan S, Çelik G, Taşesen S, Gücer S. Şifalı bitkilerde arsenik, kadmiyum ve kurşun ve bunların fraksiyonlanması. Gıda Kimyasal Toksikol. 2008; 46 (8):2871–2875. [ PubMed ] [ Google Akademik ]
            38. Sharma K, Zafar R. Taraxacum officinale Weber'in kök kallus kültürlerinde taraxerol ve taraxasterolün eşzamanlı tahmini. Int J Pharmacogn Phytochem Arş. 2014; 6 (3):540–546. [ Google Akademik ]
            39. Picman AK. Seskiterpen laktonların biyolojik aktiviteleri. Biochem Syst Ecol. 1986; 14 (3):255–281. [ Google Akademik ]
            40. Yu F, Utsumi R. Bitki mono- ve seskiterpenoid biyosentezinin çeşitliliği, düzenlenmesi ve genetik manipülasyonu. Hücre Mol Yaşam Sci. 2009; 66 (18):3043–3052. [ PubMed ] [ Google Akademik ]
            41. Kisiel W, Barszcz B. Taraxacum officinale'den ilave seskiterpenoidler ve fenolikler. Fitoterapi. 2000; 71 (3):269-273. [ PubMed ] [ Google Akademik ]
            42. Soares S, Kohl S, Thalmann S, Mateus N, Meyerhof W, De Freitas V. Farklı fenolik bileşikler, farklı insan acı tat reseptörlerini aktive eder. J Tarım Gıda Kimya. 2013; 61 (7):1525–1533. [ PubMed ] [ Google Akademik ]
            43. Bufe B, Hofmann T, Krautwurst D, Raguse JD, Meyerhof W. İnsan TAS2R16 reseptörü, beta-glukopiranozidlere tepki olarak acı tada aracılık eder. Nat Genet. 2002; 32 (3):397–401. [ PubMed ] [ Google Akademik ]
            44. Schütz K, Carle R, Schieber A. Taraxacum - fitokimyasal ve farmakolojik profili üzerine bir inceleme. J Etnofarmakol. 2006; 107 (3):313-323. [ PubMed ] [ Google Akademik ]
            45. Lyss G. Anti-inflamatuar seskiterpen lakton helenalin, doğrudan p65'i hedefleyerek transkripsiyon faktörü NF-kappa B'yi inhibe eder. J Biol Chem. 1998; 273 (50):33508–33516. [ PubMed ] [ Google Akademik ]
            46. Schmidt TJ, Thomas J. Seskiterpen laktonların yapı-aktivite ilişkileri. Stud Nat Prod Chem. 2006; 33 :309-392. [ Google Akademik ]
            47. Graziani G, Ferracane R, Sambo P, Santagata S, Nicoletto C, Fogliano V. Yüksek çözünürlüklü kütle spektrometrisi ile hindiba seskiterpen laktonlarının profillenmesi. Gıda Arş. 2015; 67 :193–198. [ Google Akademik ]
            48. Chadwick M, Trewin H, Gawthrop F, Wagstaff C. Seskiterpenoidler laktonlar: bitkilere ve insanlara faydaları. Int J Mol Sci. 2013; 14 (6):12780–127805. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            49. Koh YJ, Cha DS, Ko JS, Park HJ, Choi HD. Taraxacum officinale yapraklarının anti-inflamatuar etkisi, RAW 264.7 hücrelerinde lipopolisakkarit kaynaklı inflamatuar yanıtlar üzerinde. J Med Gıda. 2010; 13 (4):870-878. [ PubMed ] [ Google Akademik ]
            50. Xu R, Fazio GC, Matsuda SP. Triterpenoid iskelet çeşitliliğinin kökenleri üzerine. Fitokimya. 2004; 65 (3):261–291. [ PubMed ] [ Google Akademik ]
            51. Ovesna Z, Vachalkova A, Horvathova K. Taraxasterol ve beta-sitosterol: kemoprotektif/kemopreventif etkileri olan yeni doğal bileşikler. neoplazma. 2004; 51 (6):407–414. [ PubMed ] [ Google Akademik ]
            52. Akihisa T, Yasukawa K, Oinuma H, Kasahara Y, Yamanouchi S, Takido M, Kumaki K, Tamura T. Kompozit çiçeklerinden triterpen alkolleri ve anti-inflamatuar etkileri. Fitokimya. 1996; 43 (6):1255-1260. [ PubMed ] [ Google Akademik ]
            53. Abidi S. Gıdalardaki ve bitkisel yağlardaki bitki sterollerinin kromatografik analizi. J Kromatogr A. 2001; 935 (1-2):173–201. [ PubMed ] [ Google Akademik ]
            54. Villarreal ML, Alvarez L, Alonso D, Navarro V, Garcia P, Delgado G. Asteraceae türlerinden seçilen terpenoidlerin sitotoksik ve antimikrobiyal taraması. J Etnofarmakol. 1994; 42 (1):25–29. [ PubMed ] [ Google Akademik ]
            55. Kenny O, Smyth TJ, Hewage CM, Brunton NP. Karahindiba (Taraxacum officinale) kök ekstraktlarındaki fenolik bileşiklerin antioksidan özellikleri ve kantitatif UPLC-MS/MS analizi. Serbest Radikaller Antioksidanlar. 2014; 4 (1):55–61. [ Google Akademik ]
            56. Davaatseren M, Hur HJ, Yang HJ, Hwang JT, Park JH, Kim HJ, Kim MS, Kim MJ, Kwon DY, Sung MJ. Karahindiba yaprağı özü, farelerde metiyonin ve kolin eksikliği olan diyetin neden olduğu karaciğer hasarına karşı korur. J Med Gıda. 2013; 16 (1):26–33. [ PubMed ] [ Google Akademik ]
            57. Colle D, Arantes LP, Gubert P, da Luz SCA, Athayde ML, Teixeira Rocha JB, Soares FA. Taraxacum officinale yaprağı ekstresinin antioksidan özellikleri, farelerde asetaminofenin neden olduğu hepatoksisiteye karşı koruyucu etkide rol oynar. J Med Gıda. 2012; 15 (6):549–556. [ PubMed ] [ Google Akademik ]
            58. Chkhikvishvili ID, Kharebava GI. Gürcistan'da yetişen çeşitli bitkilerde kikorik ve klorojenik asitler. Prikl Biokhim Mikrobiol. 2001; 37 (2):214–217. [ PubMed ] [ Google Akademik ]
            59. Kang J, Liu Y, Xie MX, Li S, Jiang M, Wang YD. İnsan serum albümininin klorojenik asit ve ferulik asit ile etkileşimleri. Biochim Biophys Acta. 2004; 1674 (2):205–214. [ PubMed ] [ Google Akademik ]
            60. Nakatani N, Kayano S, Kikuzaki H, Sumino K, Katagiri K, Mitani T. Prune (Prunus d omestica L.) J Agric Food Chem. 2000; 48 (11):5512–5516. [ PubMed ] [ Google Akademik ]
            61. Tousch D, Lajoix AD, Hosy E, Azay-Milhau J, Ferrare K, Jahannault C, Cros G, Petit P. Chicoric acid, insülin salınımını ve glukoz alımını artırabilen yeni bir bileşik. Biochem Biophys Res Commun. 2008; 377 (1):131–145. [ PubMed ] [ Google Akademik ]
            62. Kim M. Hindibanın suda çözünür özü, bağırsakları perfüze edilmiş sıçanlarda kolesterol alımını azaltır. Nutr Res. 2000; 20 (7):1017–1026. [ Google Akademik ]
            63. Kim M, Shin HK. Suda çözünür hindiba özütü, sıçanlarda serum ve karaciğer lipid konsantrasyonlarını, çekal kısa zincirli yağ asidi konsantrasyonlarını ve fekal lipid atılımını etkiler. J Nutr. 1998; 128 (10):1731–1736. [ PubMed ] [ Google Akademik ]
            64. Ata S, Farooq F, Javed S. Pakistan'ın 24 yaygın tıbbi bitkisinin element profili ve geleneksel kullanımlarla doğrudan bağlantısı. J Med Tesisleri Arş. 2011; 5 (26):6164-6168. [ Google Akademik ]
            65. Komatsu M, Schermerhorn T, Noda M, Straub SG, Aizawa T, Sharp GW. Hücre dışı Ca2 + yokluğunda glikoz tarafından insülin salınımının arttırılması: uyaran-salgı eşleşmesine ilişkin yeni görüşler. Şeker hastalığı. 1997; 46 (12):1928–1938. [ PubMed ] [ Google Akademik ]
            66. Mir MA, Sawhney SS, Jassal MM. Taraxacum officinale'nin çeşitli ekstraktlarının in vitro antidiyabetik çalışmaları. İlaç İnov. 2015; 4 (1):61–66. [ Google Akademik ]
            67. Gonzalez-Castejon M, Visioli F, Rodriguez-Casado A. Karahindibanın çeşitli biyolojik aktiviteleri. Nutr Rev. 2012; 70 (9):534-547. [ PubMed ] [ Google Akademik ]
            68. Bailey C, Gün C. Metformin: botanik arka planı. Pratisyen Diyabet İnt. 2004; 21 (3):115–117. [ Google Akademik ]
            69. Brunkhorst C, Schneider E. Akarboz üreten bakteri Actinoplanes sp.'de maltoz ve maltotrioz taşınımının karakterizasyonu. Res Mikrobiyol. 2005; 156 (8):851-857. [ PubMed ] [ Google Akademik ]
            70. Resnick HE, Howard BV. Diyabet ve kardiyovasküler hastalık. Annu Rev Med. 2002; 53 :245–267. [ PubMed ] [ Google Akademik ]
            71. Xiao H, Xie G, Wang J, Hou X, Wang X, Wu W, Liu X. Şikorik asit, yüksek yağlı diyetle beslenen farelerde hepatik steatoz, inflamasyon ve oksidatif stresi azaltarak obeziteyi önler. Gıda Arş. 2013; 54 (1):345–353. [ Google Akademik ]
            72. Hamden K, Carreau S, Boujbiha MA, Lajmi S, Aloulou D, Kchaou D, Elfeki A. Diyabetik erkek sıçan pankreas ve karaciğerinde hiperglisemi, stres oksidan, karaciğer fonksiyon bozukluğu ve histolojik değişiklikler: 17 beta-estradiolün koruyucu etkisi. Steroidler. 2008; 73 (5):495–501. [ PubMed ] [ Google Akademik ]
            73. Giugliano D, Ceriello A, Paolisso G. Oksidatif stres ve diyabetik vasküler komplikasyonlar. Diyabet bakımı. 1996; 19 (3):257–267. [ PubMed ] [ Google Akademik ]
            74. Kaneto H, Katakami N, Kawamori D, Miyatsuka T, Sakamoto K, Matsuoka TA, Matsuhisa M, Yamasaki Y. Diyabetin patogenezinde oksidatif stres katılımı. Antioksit Redoks Sinyali. 2007; 9 (3):355–366. [ PubMed ] [ Google Akademik ]
            75. Cheng DM, Pogrebnyak N, Kuhn P, Krueger CG, Johnson WD, Raskin I. Anti-diyabetik özelliklere sahip yüksek polifenol kırmızı marulun geliştirilmesi ve fitokimyasal karakterizasyonu. Plo Bir. 2014; 9 (3):934–411. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            76. Hussain Z, Waheed A, Qureshi RA, Burdi DK, Verspohl EJ, Khan N, Hasan M. Pakistan'ın İslamabad ve Murree bölgesinin şifalı bitkilerinin INS-1 hücrelerinden insülin salgılanması üzerindeki etkisi. Fitoter Araş. 2004; 18 (1):73–77. [ PubMed ] [ Google Akademik ]
            77. Seo S, Koo H, An H, Kwon K, Lim B, Seo E, Ryu D, Moon G, Kim H, Kim H, Hong SH. Taraxacum officinale, sıçanlarda kolesistokinin kaynaklı akut pankreatite karşı korur. Dünya J Gastroenterol. 2005; 11 (4):597–599. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            78. Koo HN, Hong SH, Song BK, Kim CH, Yoo YH, Kim HM. Taraxacum officinale, Hep G2 hücrelerinde TNF-alfa ve IL-1alfa salgılanması yoluyla sitotoksisiteyi indükler. Hayat Bilimi. 2004; 74 (9):1149–1157. [ PubMed ] [ Google Akademik ]
            79. Zhang X, Xiong H, Liu L. Taraxasterolün, lipopolisakkarit ile indüklenen RAW 264.7 makrofajlarında inflamatuar yanıtlar üzerindeki etkileri. J Etnofarmakol. 2012; 141 (1):206–211. [ PubMed ] [ Google Akademik ]
            80. Patel DK, Prasad SK, Kumar R, Hemalatha S. İnsülin mimetik özelliği olan antidiyabetik tıbbi bitkilere genel bakış. Asya Pac J Trop Biomed. 2012; 2 (4):320–330. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            81. Jones PM, Persaud SJ. Protein kinazlar, protein fosforilasyonu ve pankreas beta hücrelerinden insülin salgılanmasının düzenlenmesi. Endocr Rev. 1998; 19 (4):429-461. [ PubMed ] [ Google Akademik ]
            82. Yakes FM, Van Houten B. Mitokondriyal DNA hasarı, oksidatif stresin ardından insan hücrelerinde nükleer DNA hasarından daha kapsamlıdır ve daha uzun süre devam eder. Proc Natl Acad Sci US A. 1997; 94 (2):514–519. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            83. Hu C, Kitts DD. Karahindiba (Taraxacum officinale) çiçek özü hem reaktif oksijen türlerini hem de nitrik oksidi baskılar ve in vitro lipid oksidasyonunu önler. Bitkisel ilaç. 2005; 12 (8):588-597. [ PubMed ] [ Google Akademik ]
            84. Leung AY. Ortak doğal bileşenlerin ansiklopedisi: gıda, ilaç ve kozmetikte kullanılır. John Wiley; New York: 1996. s. 205-207. [ Google Akademik ]
            85. Ceballos-Picot I, Witko-Sarsat V, Merad-Boudia M, Nguyen AT, Thevenin M, Jaudon MC, Zingraff J, Verger C, Jingers P, Descamps-Latscha B. Glutatyon antioksidan sistem olarak bir oksidatif stres belirteci kronik böbrek yetmezliği. Serbest Radic Biol Med. 1996; 21 (6):845-853. [ PubMed ] [ Google Akademik ]
            86. Del Rio D, Stewart AJ, Pellegrini N. Toksik molekül ve oksidatif stresin biyolojik belirteci olarak malondialdehit üzerine son çalışmaların bir incelemesi. Nutr Metab Kardiyovasküler Dis. 2005; 15 (4):316-328. [ PubMed ] [ Google Akademik ]
            87. Robertson R, Zhou H, Zhang T, Harmon JS. Tip 2 diyabette beta hücresinin glikoz toksisitesi için bir mekanizma olarak kronik oksidatif stres. Hücre Biyokimya Biyofizi. 2007; 48 (2-3):139–146. [ PubMed ] [ Google Akademik ]
            88. Robertson RP, Harmon J, Tran PO, Poitout V. Tip 2 diyabette beta hücre glikoz toksisitesi, lipotoksisite ve kronik oksidatif stres. Şeker hastalığı. 2004; 53 (1):119–124. [ PubMed ] [ Google Akademik ]
            89. You Y, Yoo S, Yoon HG, Park J, Lee YH, Kim S, Oh KT, Lee J, Cho HY, Jun W. Taraxacum officinale (karahindiba) kökünden elde edilen sulu ekstraktın in vitro ve in vivo hepatoprotektif etkileri alkol kaynaklı oksidatif strese karşı. Gıda Kimyasal Toksikol. 2010; 48 (6):1632-1637. [ PubMed ] [ Google Akademik ]
            90. Czinner E, Hagymasi K, Blazovics A, Kery A, Szoke E, Lemberkovics E. Helichrysi flos'un mikrozomal lipid peroksidasyonu üzerindeki in vitro etkisi. J Etnofarmakol. 2001; 77 (1):31–35. [ PubMed ] [ Google Akademik ]
            91. Hagymasi K, Blazovics A, Feher J, Lugasi A, Kristo ST, Kery A. Karahindiba antioksidanlarının mikrozomal lipid peroksidasyonu üzerindeki in vitro etkisi. Fitoter Araş. 2000; 14 (1):43–44. [ PubMed ] [ Google Akademik ]
            92. Hu C, Kitts DD. Karahindiba (Taraxacum officinale) çiçeği özü hem reaktif oksijen türlerini hem de nitrik oksidi baskılar ve in vitro lipid oksidasyonunu önler. Bitkisel ilaç. 2005; 12 (8):588–597. [ PubMed ] [ Google Akademik ]
            93. Tfayli H, Bacha F, Güngör N, Arslanian S. Obez gençlerde fenotipik tip 2 diyabet: adacık hücresi antikoru negatif ve pozitif hastalarda insülin duyarlılığı ve salgılanması. Şeker hastalığı. 2009; 58 (3):738–744. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            94. Boden G. İnsülin direnci ve NIDDM patogenezinde yağ asitlerinin rolü. Şeker hastalığı. 1997; 46 (1):3–10. [ PubMed ] [ Google Akademik ]
            95. Kim MY, Kim MH, Son C, Yook H, Kim JH, Cho Y, Chun H, Kim MR. Yapraklı sebze karışımı takviyesi, yüksek yağ ve yüksek kolesterol diyeti ile beslenen C57BL/6J farelerinde lipid profillerini ve antioksidan durumunu iyileştirir. J Med Gıda. 2009; 12 (4):877-884. [ PubMed ] [ Google Akademik ]
            96. Grundy SM, Brewer HB, Cleeman JI, Smith SC, Lenfant C. Metabolik sendromun tanımı: Tanımla ilgili bilimsel konularda Ulusal Kalp, Akciğer ve Kan Enstitüsü/Amerikan Kalp Derneği konferansı raporu. Dolaşım. 2004; 109 (3):433–438. [ PubMed ] [ Google Akademik ]
            97. Eddouks M, Maghrani M, Lemhadri A, Ouahidi ML, Jouad H. Fas'ın güneydoğu bölgesinde diyabet, hipertansiyon ve kalp hastalıklarının tedavisinde kullanılan tıbbi bitkilerin etnofarmakolojik araştırması (Tafilalet) J Ethnopharmacol. 2002; 82 (2-3):97–103. [ PubMed ] [ Google Akademik ]
            98. Prabhakar PK, Doble M. Tıbbi bitkiler kullanılarak şeker hastalığına yönelik hedefe dayalı bir terapötik yaklaşım. Curr Diyabet Rev. 2008; 4 (4):291–308. [ PubMed ] [ Google Akademik ]
            99. Mukherjee PK, Maiti K, Mukherjee K, Houghton PJ. Hipoglisemik potansiyele sahip Hint şifalı bitkilerinden elde edilir. J Etnofarmakol. 2006; 106 (1):1–28. [ PubMed ] [ Google Akademik ]
            100. Bnouham M, Ziyyat A, Mekhfi H, Tahri A, Legssyer A. Potansiyel antidiyabetik aktiviteye sahip şifalı bitkiler - on yıllık bitkisel ilaç araştırmasının bir incelemesi (1990-2000) Int J Diyabet Metab. 2006; 14 (1):1–25. [ Google Akademik ]
            101. Jarald E, Joshi SB, Jain DC. Diyabet ve bitkisel ilaçlar. Iran J Pharmacol Ther. 2008; 7 (1):97–106. [ Google Akademik ]
            102. Kumar S, Narwal S, Kumar V, Prakash O. Bitkilerden elde edilen alfa-glukozidaz inhibitörleri: diyabet tedavisinde doğal bir yaklaşım. Farmakogon Rev. 2011; 5 (9):19-29. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            103. Perk J, De Backer G, Gohlke H, Graham I, Reiner Z, Verschuren WM, Albus C, Benlian P, Boysen G, Cifkova R. ve diğerleri. Klinik uygulamada kardiyovasküler hastalıkların önlenmesine ilişkin Avrupa kılavuzları (versiyon 2012). Avrupa Kardiyoloji Derneği ve diğer derneklerin klinik uygulamada kardiyovasküler hastalıkların önlenmesine ilişkin beşinci ortak görev gücü. G Ital Cardiol (Roma) 2013; 14 (5):328-392. [ PubMed ] [ Google Akademik ]
            104. Coman C, Rugina OD, Socaciu C. Antidiyabetik etkiye sahip bitkiler ve doğal bileşikler. Bot Horti Agrobo değil. 2012; 40 (1):314–325. [ Google Akademik ]
            105. Vessal M, Hemmati M, Vasei M. Quercetin'in streptozosin kaynaklı diyabetik sıçanlarda antidiyabetik etkileri. Comp Biochem Physiol Bölüm C Toxicol Pharmacol. 2003; 135 (3):357–364. [ PubMed ] [ Google Akademik ]
            106. Prabhakar P, Doble M. Tıbbi bitkiler kullanılarak şeker hastalığına yönelik hedefe dayalı bir terapötik yaklaşım. Curr Diyabet Rev. 2008; 4 (4):291–308. [ PubMed ] [ Google Akademik ]
            107. Bratanova-Tochkova TK, Cheng H, Daniel S, Gunawardana S, Liu YJ, Mulvaney-Musa J, Schermerhorn T, Straub SG, Yajima H, Sharp GW. Tetikleme ve güçlendirme mekanizmaları, granül havuzları ve bifazik insülin sekresyonu. Şeker hastalığı. 2002; 51 (1):83–90. [ PubMed ] [ Google Akademik ]
            108. Jensen J, Ruge T, Lai YC, Svensson MK, Eriksson JW. Adrenalinin tüm vücut glikoz metabolizması üzerindeki etkileri ve insan iskelet kasında glikojen sentaz ve PKB fosforilasyonunun insülin aracılı düzenlenmesi. Metabolizma. 2011; 60 (2):215–226. [ PubMed ] [ Google Akademik ]
            109. Jensen MV, Joseph JW, Ronnebaum SM, Burgess SC, Sherry AD, Newgard CB. Glikoz ile uyarılan insülin sekresyonunun kontrolünde metabolik döngü. J Physiol Endocrinol Metab. 2008; 295 (6):E1287–E1297. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            110. Çay TR. Kalsiyum deposu ve voltajdan bağımsız kalsiyum akımı yoluyla yavaş yavaş patlayan nöronların modellenmesi Sinirsel Hesaplama. 1996; 8 (5):951–978. [ PubMed ] [ Google Akademik ]
            111. McCarty MF. GLP-1 üretiminde klorojenik asit kaynaklı bir artış, yoğun kahve tüketiminin diyabet riski üzerindeki etkisine aracılık edebilir. Med Hipotezleri. 2005; 64 (4):848-853. [ PubMed ] [ Google Akademik ]
            112. Brissova M, Fowler MJ, Nicholson WE, Chu A, Hirshberg B, Harlan DM, Powers AC. Lazer taramalı konfokal mikroskopi ile insan pankreas adacık mimarisi ve kompozisyonunun değerlendirilmesi. J Histochem Cytochem. 2005; 53 (9):1087-1097. [ PubMed ] [ Google Akademik ]
            113. Macdonald PE, El-kholy W, Riedel MJ, Salapatek AM, Light PE, Wheeler MB. GLP-1'in glikoz ile uyarılan insülin salgılanması süreci üzerindeki çoklu etkileri. Şeker hastalığı. 2002; 51 (Ek 3):S434–S442. [ PubMed ] [ Google Akademik ]
            114. Stoffers DA, Thomas MK, Habener JF. Homeodomain proteini IDX-1. Trendler Endokrinol Metab. 1997; 8 (4):145–151. [ PubMed ] [ Google Akademik ]
            115. Nordentoft I, Jeppesen PB, Hong J, Abudula R, Hermansen K. Isosteviol, insülin duyarlılığını arttırır ve diyabetik KKAy faresinin adacıklarındaki anahtar insülin düzenleyici genlerin ve transkripsiyon faktörlerinin gen ekspresyonunu değiştirir. Diyabet Obezite Metab. 2008; 10 (10):939-949. [ PubMed ] [ Google Akademik ]
            116. Desvergne B, Wahli W. Peroksizom proliferatörü ile aktive olan reseptörler: metabolizmanın nükleer kontrolü. Endocr Rev. 1999; 20 (5):649–688. [ PubMed ] [ Google Akademik ]
            117. Guri AJ, Hontecillas R, Bassaganya-Riera J. Peroksizom proliferatörü ile aktive olan reseptörler: moleküler beslenme ile metabolik sendromun köprülenmesi. Klinik Nutr. 2006; 25 (6):871-885. [ PubMed ] [ Google Akademik ]
            118. Grimaldi PA. PPARbeta'nın metabolizmadaki düzenleyici işlevleri: metabolik sendromun tedavisi için çıkarımlar. Biochim Biophys Acta. 2007; 1771 (8):983-990. [ PubMed ] [ Google Akademik ]
            119. Sakamoto J, Kimura H, Moriyama S, Odaka H, ​​Momose Y, Sugiyama Y, Sawada H. Pioglitazon ile insan peroksizom proliferatörü ile aktive olan reseptör (PPAR) alt tiplerinin aktivasyonu. Biochem Biophys Res Komün. 2000; 278 (3):704–711. [ PubMed ] [ Google Akademik ]
            120. Christensen KB, Minet A, Svenstrup H, Grevsen K, Zhang H, Schrader E, Rimbach G, Wein S, Wolffram S, Kristiansen K. ve diğerleri. Potansiyel antidiyabetik özelliklere sahip bitki özlerinin belirlenmesi: insan peroksizom proliferatörle aktive olan reseptör (PPAR), adiposit farklılaşması ve insülin ile uyarılan glikoz alımı üzerindeki etki. Fitoter Araş. 2009; 23 (9):1316-1325. [ PubMed ] [ Google Akademik ]
            121. Li SY, Chang CQ, Ma FY, Yu CL. Klorojenik asidin lipidler ve glukoz metabolizması üzerindeki modüle edici etkileri ve yüksek yağlı diyetle beslenen altın hamsterlarda hepatik peroksizom proliferatörle aktive olan reseptör-alfa ekspresyonu. Biomed Environ Sci. 2009; 22 (2):122–129. [ PubMed ] [ Google Akademik ]
            122. Scheen AJ. Tip 2 diyabetin önlenmesinde alfa-glukozidaz inhibitörlerinin rolü var mı? İlaçlar. 2003; 63 (10):933–951. [ PubMed ] [ Google Akademik ]
            123. Zimmet P, Alberti KG, Shaw J. Diyabet salgınının küresel ve toplumsal etkileri. Doğa. 2001; 414 (6865):782-787. [ PubMed ] [ Google Akademik ]
            124. Samuel VT, Liu ZX, Qu X, Elder BD, Bilz S, Befroy D, Romanelli AJ, Shulman GI. Alkolsüz yağlı karaciğer hastalığında hepatik insülin direncinin mekanizması. J Biol Chem. 2004; 279 (31):32345–32353. [ PubMed ] [ Google Akademik ]
            125. Cornier MA, Dabelea D, Hernandez TL, Lindstrom RC, Steig AJ, Stob NR, Van Pelt RE, Wang H, Eckel RH. Metabolik sendrom. Endocr Rev. 2008; 29 (7):777-822. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            126. Davaatseren M, Hur HJ, Yang HJ, Hwang JT, Park JH, Kim HJ, Kim MJ, Kwon DY, Sung MJ. Taraxacum resmi (karahindiba) yaprağı özütü, yüksek yağlı diyet kaynaklı alkolsüz yağlı karaciğeri hafifletir. Gıda Kimyasal Toksikol. 2013; 58 :30–36. [ PubMed ] [ Google Akademik ]
            127. Cho SY, Park JY, Park EM, Choi MS, Lee MK, Jeon SM, Jang MK, Kim MJ, Park YB. Karahindiba suyu ekstraktının eklenmesiyle streptozotosin kaynaklı diyabetik sıçanlarda hepatik antioksidan enzim aktivitelerinin ve lipid profilinin değişimi. Clin Chim Acta. 2002; 317 (1-2):109–117. [ PubMed ] [ Google Akademik ]
            128. Cho AS, Jeon SM, Kim MJ, Yeo J, Seo KI, Choi MS, Lee MK. Klorojenik asit, anti-obezite özelliği sergiler ve yüksek yağlı diyete bağlı obez farelerde lipid metabolizmasını geliştirir. Gıda Kimyasal Toksikol. 2010; 48 (3):937-943. [ PubMed ] [ Google Akademik ]
            129. Boden G, Shulman GI. Obezite ve tip 2 diyabette serbest yağ asitleri: insülin direnci ve beta hücre disfonksiyonunun gelişimindeki rollerinin tanımlanması. Eur J Clin Invest. 2002; 32 (3):14–23. [ PubMed ] [ Google Akademik ]
            130. Prentki M, Corkey BE. Beta-hücre sinyal molekülleri malonil-CoA ve sistolik uzun zincirli açil-CoA, obezite ve NIDDM'nin çoklu doku kusurlarında rol oynuyor mu? Şeker hastalığı. 1996; 45 (3):273–283. [ PubMed ] [ Google Akademik ]
            131. Consoli A, Nurjhan N, Capani F, Gerich J. NIDDM'de artan hepatik glukoz üretiminde glukoneogenezin baskın rolü. Şeker hastalığı. 1989; 38 (5):550-557. [ PubMed ] [ Google Akademik ]
            132. Hotamisligil GS, Shargill NS, Spiegelman BM. Tümör nekroz faktörü-alfa'nın adipoz ekspresyonu: obeziteye bağlı insülin direncinde doğrudan rol. Bilim. 1993; 259 (5091):87-91. [ PubMed ] [ Google Akademik ]
            133. Harris EH. Tip 2 diyabette yüksek karaciğer fonksiyon testleri. Klinik Diyabet. 2005; 23 (3):115–119. [ Google Akademik ]
            134. Garrido DM, Corbett DF, Dwornik KA, Goetz AS, Littleton TR, McKeown SC, Mills WY, Smalley TL, Briscoe CP, Peat AJ. Küçük moleküllü GPR40 agonistlerinin sentezi ve aktivitesi. Bioorg Med Kimya Lett. 2006; 16 (7):1840–1845. [ PubMed ] [ Google Akademik ]
            135. Klabunde T, Hessler G. G-protein-bağlı reseptörleri hedeflemek için ilaç tasarım stratejileri. Kimyasal kimya. 2002; 3 (10):928–944. [ PubMed ] [ Google Akademik ]
            136. Chang L, Chiang SH, Saltiel AR. İnsülin sinyalizasyonu ve glikoz taşınmasının düzenlenmesi. Mol Med. 2005; 10 (7-12):65-71. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            137. Haber EP, Hirabara SM, Gomes AD, Curi R, Carpinelli AR, Carvalho CR. Palmitate, pankreas adacıklarında insülin sinyal yolunun ilk adımlarını modüle eder. FEBS Lett. 2003; 544 (1-3):185–188. [ PubMed ] [ Google Akademik ]
            138. Nasıl AK. cAMP/PKA ile aktin bazlı hücre göçünün düzenlenmesi. Biochim Biophys Acta. 2004; 1692 (2-3):159-174. [ PubMed ] [ Google Akademik ]
            139. Metz R, Ziff E. cAMP, C/EBP ile ilişkili transkripsiyon faktörü rNFIL-6'yı çekirdeğe yer değiştirmesi ve c-fos transkripsiyonunu indüklemesi için uyarır. Genler Dev. 1991; 5 (10):1754–1766. [ PubMed ] [ Google Akademik ]
            140. Cheynier V, Tomas-Barberan FA, Yoshida K. Polifenoller: bitkilerden çeşitli gıda ve gıda dışı kullanımlara. J Tarım Gıda Kimya. 2015; 63 (35):7589-7594. [ PubMed ] [ Google Akademik ]
            141. Çoban Halkla İlişkiler. İnsüline duyarlı dokularda fosfoinositid 3-kinaz sinyalleşmesini düzenleyen mekanizmalar. Acta Physiol Scand. 2005; 183 (1):3–12. [ PubMed ] [ Google Akademik ]
            142. Arion WJ, Canfield WK, Ramos FC, Schindler PW, Burger HJ, Hemmerle H, Schubert G, P'nin Altında, Herling AW. Klorojenik asit ve hidroksinitrobenzaldehit: hepatik glukoz 6-fosfatazın yeni inhibitörleri. Arch Biochem Biophys. 1997; 339 (2):315-322. [ PubMed ] [ Google Akademik ]
            143. Pillay TS, Makgoba MW. İnsülin direncinin moleküler mekanizmaları. S Afr Med J. 1991; 79 (10):607-613. [ PubMed ] [ Google Akademik ]
            144. Mlinar B, Marc J, Janez A, Pfeifer M. İnsülin direncinin moleküler mekanizmaları ve ilişkili hastalıklar. Clin Chim Acta. 2007; 375 (1-2):20–35. [ PubMed ] [ Google Akademik ]
            145. Petersen KF, Shulman GI. İnsülin direncinin etiyolojisi. J Med'im. 2006; 119 (5 Ek 1):S10–S16. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            146. Kobayashi H, Mitsui T, Nomura S, Ohno Y, Kadomatsu K, Muramatsu T, Nagasaka T, Mizutani S. Langerhans'ın insan pankreas adacığında glukoz taşıyıcı 4'ün ifadesi. Biochem Biophys Res Commun. 2004; 314 (4):1121–1125. [ PubMed ] [ Google Akademik ]
            147. Kanaujia A, Duggar R, Pannakal ST, Yadav SS, Katiyar CK, Bansal V, Anand S, Sujatha S, Lakshmi BS. Capparis moonii'nin meyvelerinden iki yeni gallotanninin insülinomimetik aktivitesi. Bioorg Med Chem. 2010; 18 (11):3940–3945. [ PubMed ] [ Google Akademik ]
            148. Akhtar MS, Khan QM, Khaliq T. Normoglisemik ve alloksanla tedavi edilen hiperglisemik tavşanlarda Portulaca oleracae (Kulfa) ve Taraxacum officinale'nin (Dhudhal) etkileri. J Pak Med Doç. 1985; 35 (7):207–210. [ PubMed ] [ Google Akademik ]
            149. Lovell CR, Rowan M. Karahindiba dermatiti. Kontakt dermatit. 1991; 25 (3):185–188. [ PubMed ] [ Google Akademik ]
            150. Chatterjee SJ, Ovadje P, Mousa M, Hamm C, Pandey S. İlaca dirençli insan melanom hücrelerinde apoptozu indüklemede karahindiba kökü ekstresinin etkinliği. Kanıta Dayalı Tamamlayıcı Alternatif Med. 2011; 2011 :129045. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            151. Newall CA, Anderson LA, Phillipson JD. Bitkisel ilaçlar. Sağlık çalışanları için bir rehber. Eczane Basın; 1996. s. 296–297. [ Google Akademik ]
            152. Akashi T, Furuno T, Takahashi T, Ayabe SI. Kültürlenmiş hücrelerde triterpenoidlerin biyosentezi ve Taraxacum officinale'nin rejenere ve yabani bitki organları. Fitokimya. 1994; 36 (2):303–308. [ Google Akademik ]
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7


              İnülin Nedir İnülinin Faydaları Ve Hangi Gıdalarda Daha Çok Bulunur


              Sinir Ucu Tümörü Karşı Etkili Bitkiler Nelerdir Karahindiba Etkileri Nelerdir

              Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 21 September 2022, 10:02 ) değiştirilmiştir.
              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap

              Hazırlanıyor...
              X