Duyuru

Collapse
No announcement yet.

Kara Halile, Terminalia Chebula, Myrobalan, Haritaki

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Kara Halile, Terminalia Chebula, Myrobalan, Haritaki

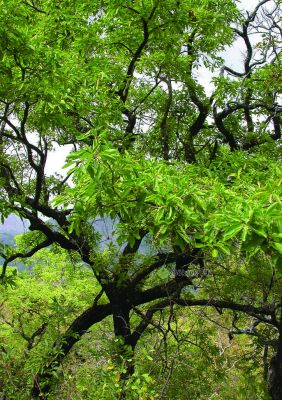
    KARA Halile, Karahalile, Terminalia chebula
    Combretaceae ailesindendir.
    Aile: CombretaceaeBengali / yöresel adı: Haritaki, Hartaki.

    Tribal adı: Horttal, Oittal (Chakma); Kaho (Mogh); Artak (Garo).
    İngilizce adı: Black Myrobalan, Chebulic Myrobalan, Mürekkep Somun, Safra somunu.

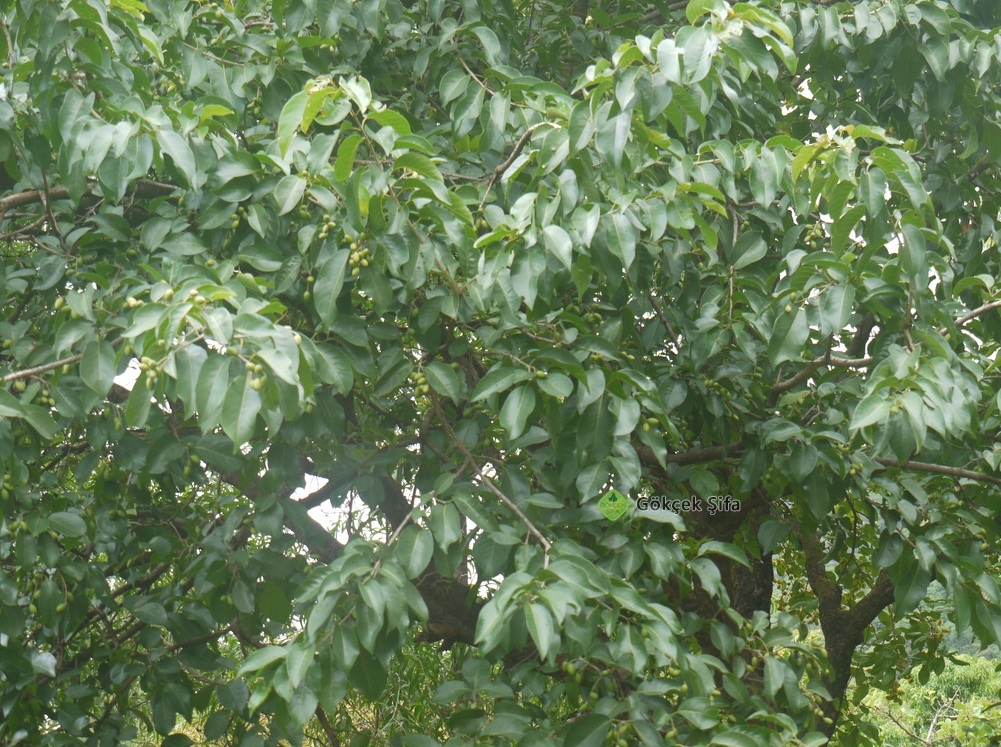
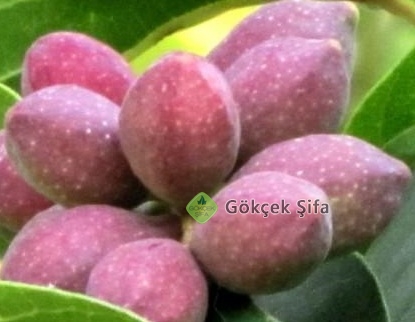
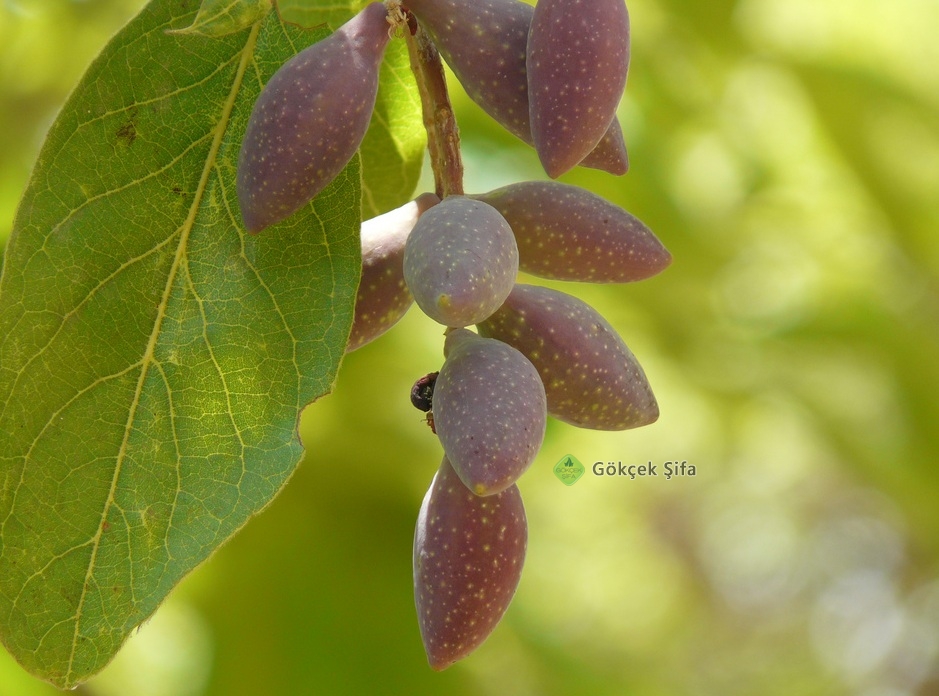
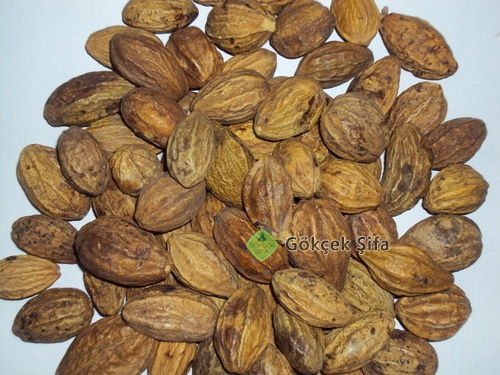
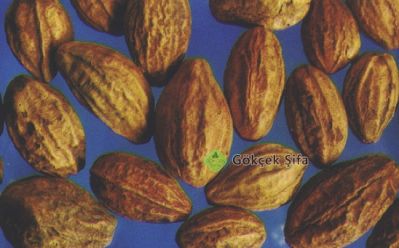
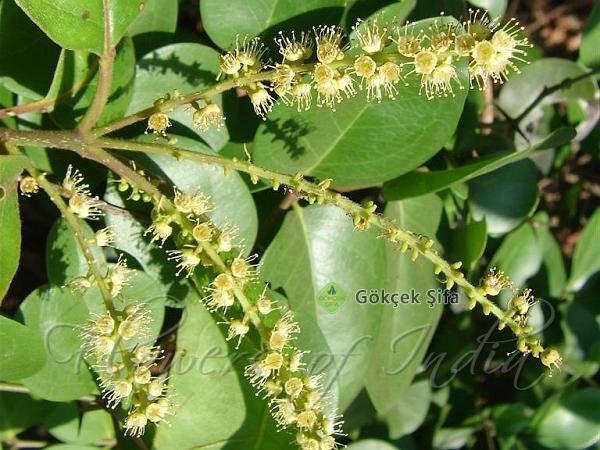
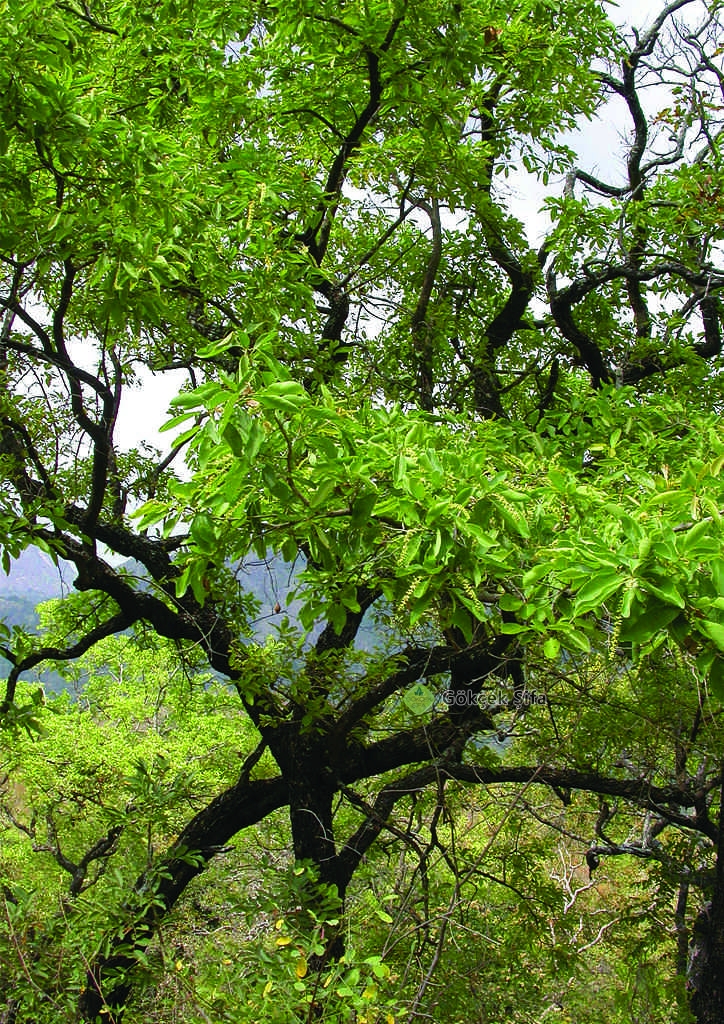
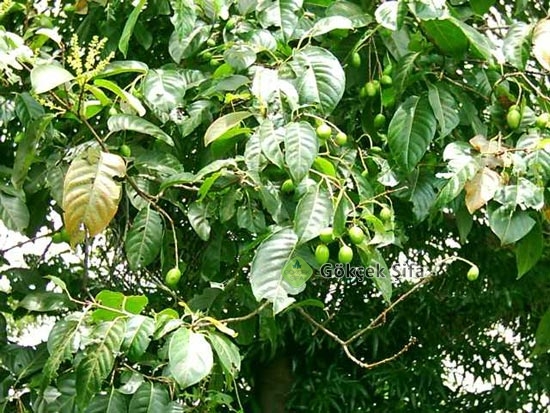
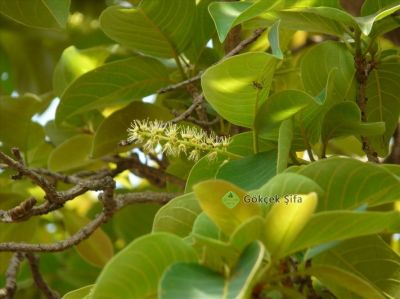
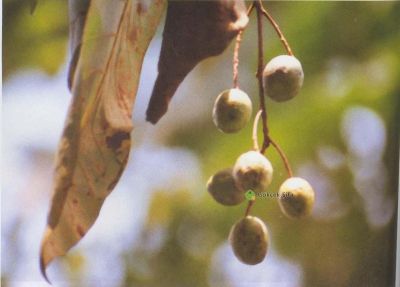
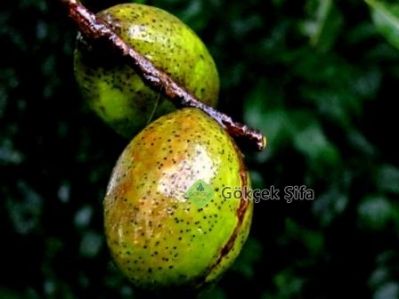
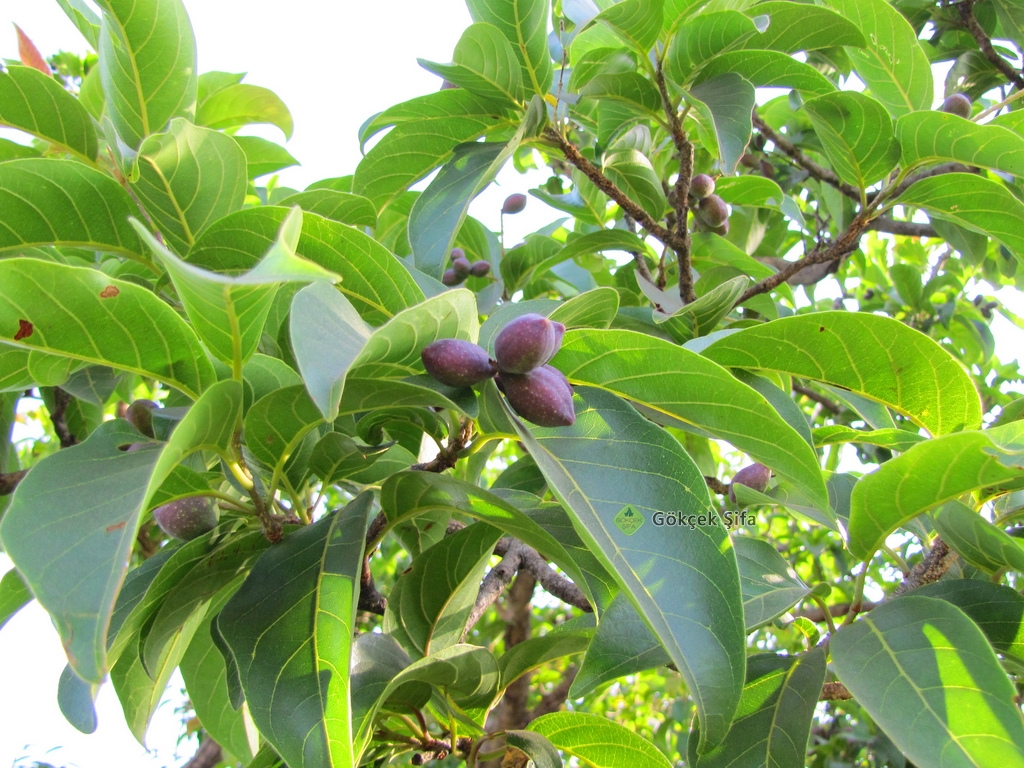
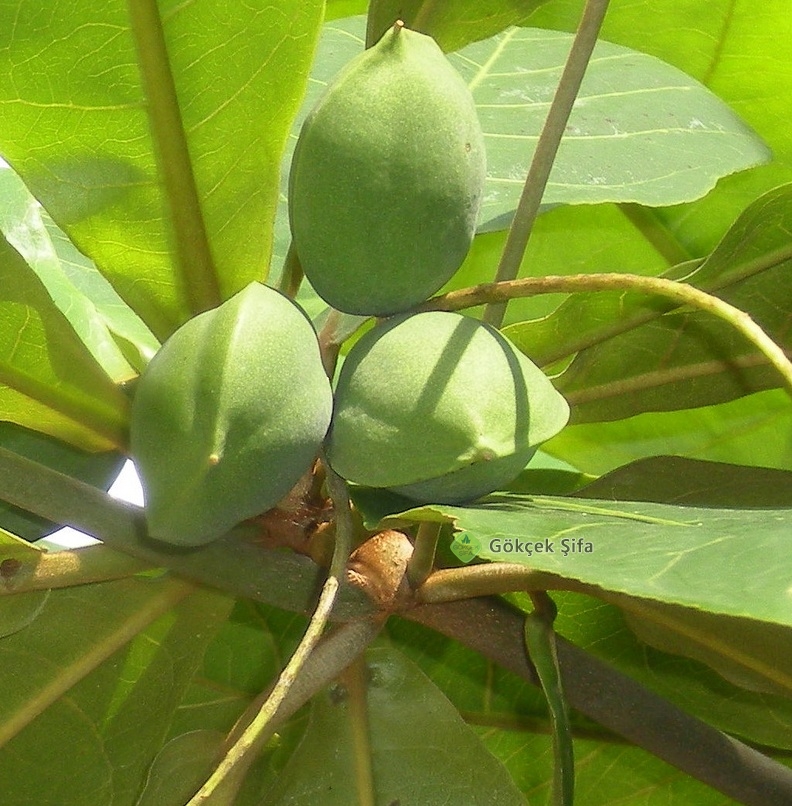
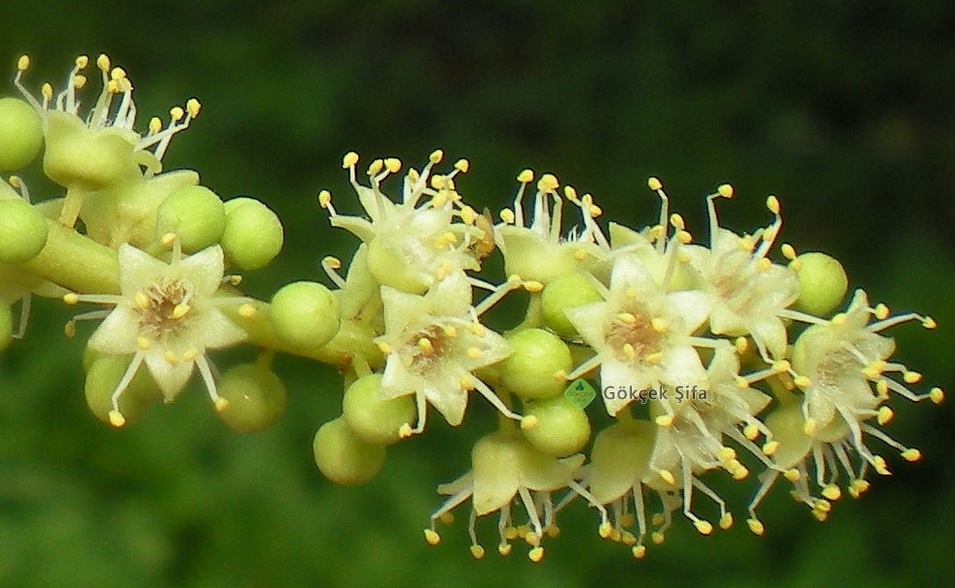
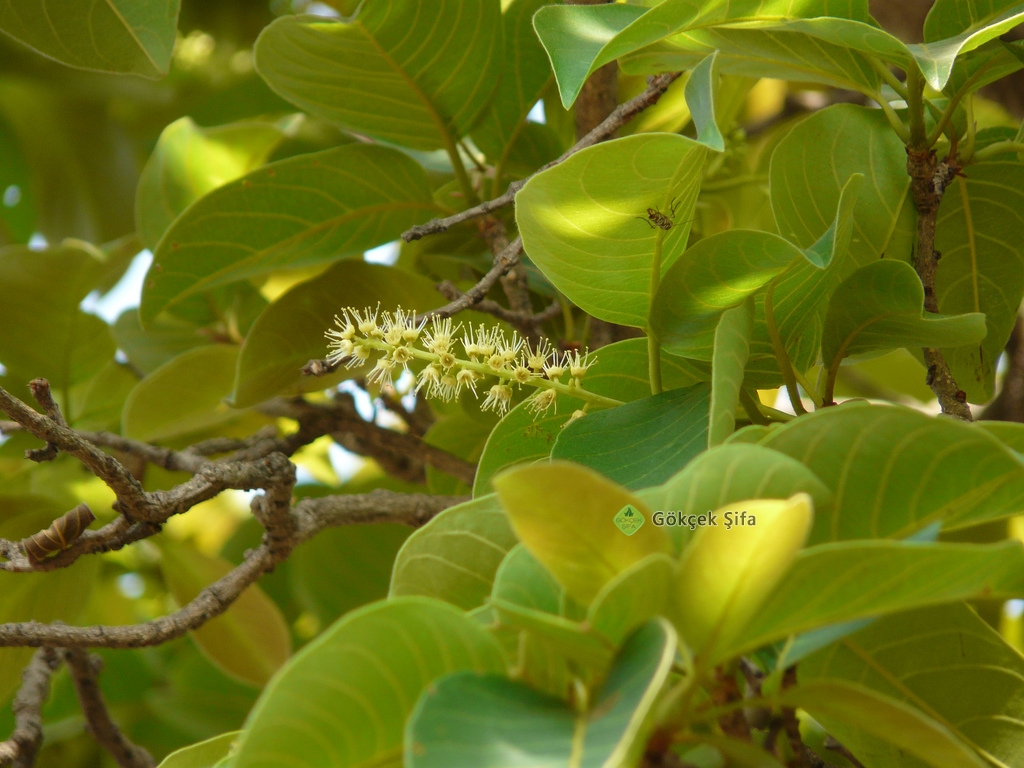
    Büyük, orta ölçekli bir Ağaç kışın yapraklarını döker ve yüksek 25-30 m. Yapraklar eliptik 7-18 cm uzunluğunda, kısa acuminate, tabanı yuvarlak veya kama şeklinde. Küçük Çiçek, terminal veya üst yapraklarından aksiller kısa sivri sesil sarımsı beyaz genelinde 4 mm. Bir kama şeklinde taban ovoid, meyve bir sert çekirdekli meyve, 2.5-5.0 cm uzunluğunda, daha çok ya da daha az 5-açılı.

    Bilgileri kullanarak:
    Stomatit, boğaz ağrısı, astım yararlıdır, Kalp hastalıkları, kanama, kabızlık, leucoderma, Kabızlık Meyve mide kuvvetlendirici, tonik, gaz giderici, balgam söktürücü ve antidizenterik vardır , ağrılı adet görme ve hazımsızlık, kronik ülserler, yaralar dışarıdan uygulanan. Ayrıca ateş, idrar hastalıkları, romatizma, şişkinlik, hıçkırık, kolik ve genişlemiş dalak ve karaciğer kullanılır. Olgunlaşmamış meyve dizanteri ve ishal faydalıdır, büzücü ve müshil olduğunu. Olgun meyve, müshil tonik ve gaz giderici olduğunu; oftalmi, dalak ve kazıkların hastalıklarında iyi. Toz meyve çürük dişler, kanama ve ülsere etlerinde yararlıdır. Bark diüretik ve kardiyotonik olduğunu.

    Yaprak etanolle ekstrakte antibakteriyel ve anti-mantar özelliklerine ve geniş bir yelpazesine sahiptir. Bazı antibakteriyel bileşikler meyve izole edilmiştir. Meyve Chebulin mevcut düz kaslarda spazm aktivite (Ghani, 2003) sahibidir

    Kimyasal bileşenleri:
    Tanenler, steroidal Triterpenoids, flavonoidler, glikositler, reçineler, proteinler, amino asitler, şekerler ve mineraller azaltılması bitkide mevcut bulunmaktadır. Meyve taninler, tannik asit, betulinic asit, chebulinic asit, chebulin, Chebulic asit, luteoic asit ve diğer organik asitler, β-sitosterol ve şeker karışımı, bir sıkıştırıcı madde yaklaşık% 30 içerir. Antrakinon benzeri müshildir ilkeler de meyveler meydana gelir. Çekirdek yağ asitleri palmitik, stearik, oleik, linoleik ve behenik asit ve arachidic oluşan 30% yağ elde edilir. Bark ve yaprakları β-sitosterol, tanenler, d-katekol, gallik ve ellagic asit içerirler. Fındık ayrıca tanen ve chebulagic chebulinic ve gallik asit ve gorilagin (Ghani, 2003) içerir. Çiçekler chebulin (Rastogi & Mehrotra, 1990) içerir.

    .................................................. ......


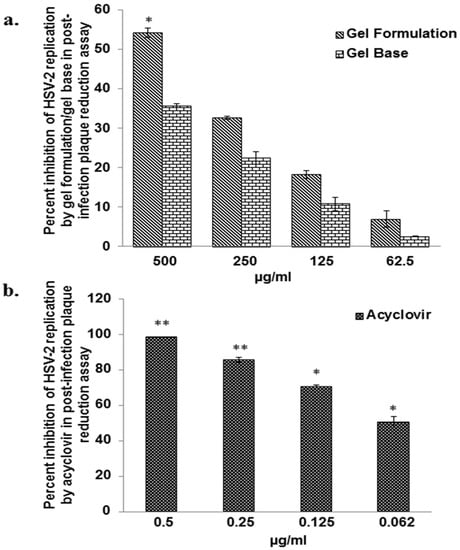
    Anti-İnsan İmmün Yetmezlik Virüsü (HIV) -1 Aktivitesi İçin Geliştirilmiş Bitkisel Jel Formülasyonu İn Vitro HSV-2 Enfeksiyonunu da Engelliyor

    tarafından Nripendra Nath Mishra, Ajay Kesharwani, Aakanksha Agarwal, Suja Kizhiyedath Polachira, Reshmi Nair, ve Satish Kumar Gupta Üreme Hücresi Biyolojisi Laboratuvarı, Ulusal İmmünoloji Enstitüsü, Aruna Asaf Ali Marg, Yeni Delhi 110 067, Hindistan, Kurumsal Ar-Ge Merkezi, HLL Lifecare Limited, Akkulum, Thiruvananthapuram, Kerala 695017, Hindistan Yazışmaların ele alınması gereken yazar. Güncel Adres: Terapötik Monoklonal Antikor Laboratuvarı, Ulusal Biyoloji Enstitüsü, Sektör-62, NOIDA, Hindistan. Şimdiki Adresi: Anatomi ve Hücre Biyolojisi, Tıp Fakültesi, Saarland Üniversitesi, Homburg, Saar, Almanya.

    Geçerli Adres: Moleküler Bilimler ve Mühendislik Laboratuvarı, Amity ClickChemistry Araştırma ve Çalışmaları Enstitüsü, Amity Üniversitesi, NOIDA, Hindistan.
    Virüsler 2018 , 10 (11), 580; https://doi.org/10.3390/v10110580 Geliş: 5 Eylül 2018 / Revize: 9 Ekim 2018 / Kabul: 12 Ekim 2018 / Yayınlanma: 24 Ekim 2018
    (Bu makale HSV Araştırmasında Doğal Ürünlerin Son Gelişmeleri Özel Sayısı'na aittir )

    Öz
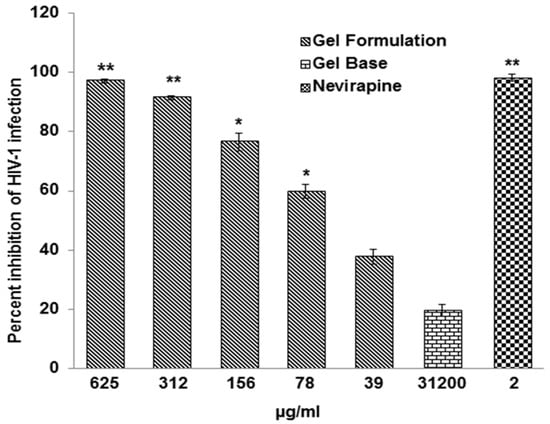
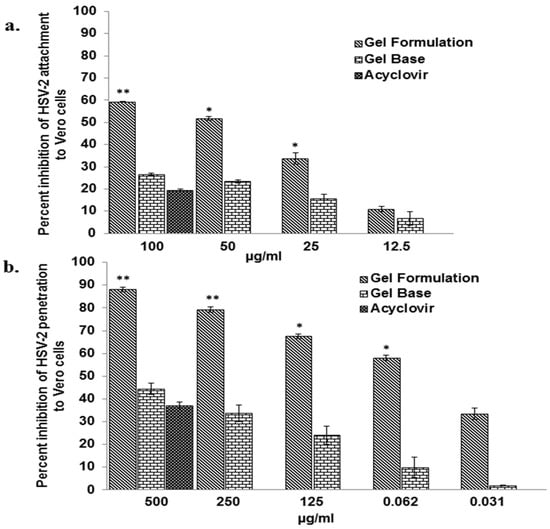
    Herpes simpleks virüs-2 (HSV-2) enfeksiyonu, genital ülserlerin en yaygın nedenidir. Ülserlerin etkisi ayrıca insan immün yetmezlik virüsü (HIV) enfeksiyonu ile güçlü bir bağlantı olduğunu gösterir. Antiviral ilaçların komplikasyonları, ilaç direnci ve yan etkileri HSV-2 enfeksiyonunun tedavisini zorlaştırmaktadır. Bitkisel ilaçlar HSV-2 ve HIV enfeksiyonlarına karşı potansiyel göstermiştir. Bu bağlamda, Acacia catechu , Lagerstroemia speciosa , Terminalia chebula ve Phyllanthus emblica'dan % 50 etanolik ekstrakt içeren poliherbal jel formülasyonu geliştirilmiştir. Jel formülasyonu anlamlı ölçüde IC ile iki HIV-1 ve HSV-2 enfeksiyonları karşı virüsidal aktivite göstermiştir 50Sırasıyla 55,93 ± 5,30 µg / mL ve 27,26 ± 4,87 µg / mL. Aynı zamanda, bir IC ile Vero hücrelerinde HSV-2 eki ve penetrasyon inhibe 50 önemli ölçüde asiklovir daha düşük olan, sırası ile = 46.55 ± 1.25 ng / mL ve 54.94 ± 2.52 ug / ml. Bununla birlikte, asiklovir, IC ile enfeksiyon sonrası testinde daha güçlü olan 50 = 0.065 ± 0.01 ug / ml jel formülasyonu gösterdi, oysa bir IC 50= 469.05 ± 16.65 µg / mL, benzer koşullar altında. Jel formülasyonu, laktobasillerin, insan vajinal keratinosit hücrelerinin (Vk2 / E6E7) ve Caco-2 hücrelerinin tek tabakasının bütünlüğünün canlılığı üzerinde hiçbir inhibitör etki göstermedi. Jel formülasyonu, proinflamatuar sitokinlerin sekresyonunda ve mutajenik indekste önemli bir artışa yol açmadı. Önerilen jel formülasyonu, cinsel yolla bulaşan HIV-1 ve HSV-2'nin önlenmesi için ümit verici bir aday mikrobisid olabilir.
    Anahtar Kelimeler: anti-HSV-2 aktivitesi ; anti-HIV-1 aktivitesi ; bitkisel jel formülasyonu ; laktobasilin canlılığı ; Proinflamatuar sitokinler
    Songul Satar Gökalp
    Babama zona hastalığı teşhisi konmuştu yani gece hastalığı
    Kara Halile kapsülü ve Geven kapsülü kullandı
    Ürünler harika hastalıktan eser kalmadı
    KAYNAK
    Konu ozgurcay tarafından (https://bitkiara.com/vb5/member/18435-ozgurcay Saat 30 November 2023, 14:19 ) değiştirilmiştir.

  • #2
    Terminalia chebula Retz özütünün anti-HSV-2 aktivitesi ve bileşenleri, chebulagic ve chebulinik asitler
    • Ajay Kesharwani ,
    • Suja Kizhiyedath Polachira ,
    • Reshmi Nair ,
    • Aakanksha Agarwal ,
    • Nripendra Nath Mishra ve
    • Satish Kumar Gupta

    BMC Tamamlayıcı ve Alternatif Tıp Ses 17 , Makale numarası: 110 ( 2017 ) Bu makaleyi alıntılayın

    Öz
    Cinsel yolla bulaşan herpes simpleks virüs-2 (HSV-2) enfeksiyonu için yeni ve etkili terapötiklerin geliştirilmesi, halk sağlığı açısından önemlidir. Tıbbi bitkilerden elde edilen doğal ürünleri tespit etmek amacıyla, bu çalışmada, Terminalia chebula Retz'in potansiyeli, HSV-2'ye karşı aktivitesi açısından araştırılmıştır.

    Yöntemler
    Terminalia chebula Retz meyveleri, % 50 etanolik özüt hazırlamak için kullanıldı. Ek olarak, her ikisi de T. chebula'dan saflaştırılmış chebulagic asit ve chebulinik asit de kullanıldı. Ekstrakt ve saflaştırılmış bileşikler ilk olarak MTT testi ile Vero hücreleri üzerindeki in vitro sitotoksisitelerini belirlemek için kullanıldı. T. chebula ekstresi, chebulagic asit, chebulinik asit ve asiklovir daha sonra doğrudan anti-viral aktivite ve HSV-2'nin Vero hücrelerine bağlanmasını ve penetrasyonunu inhibe etme yetenekleri açısından değerlendirildi. Ek olarak, anti-HSV-2 aktiviteleri de in vitro enfeksiyon sonrası plak azaltma deneyi ile belirlendi.

    Sonuçlar
    Vero hücrelerinin kullanıldığı sitotoksisite analizi  , ekstrakt için CC 50 = 409.71 ± 47.70 μg / ml gösterirken, chebulagic asit ve chebulinik asit, 200 μg / ml'ye kadar% 95'ten fazla hücre canlılığı gösterdi. Çıkarmak T. chebula (IC 50  = 0.01 ± 0.0002 ug / ml), chebulagic (IC 50  = 1.41 ± 0.51 ug / ml) ve chebulinic asitler (IC 50  = 0.06 ± 0.002 ug / ml) in vitro bağlı kuvvetli bir doz gösterdi HSV-2'ye karşı doğrudan anti-viral aktivite. Bunlar ayrıca HSV-2'nin Vero hücrelerine bağlanmasının yanı sıra penetrasyonunu da etkili bir şekilde engelledi. Buna karşılık, asiklovir zayıf doğrudan anti-viral aktivite gösterdi ve önemli ölçüde başarısız oldu ( p > 0.05) 50 μg / ml'ye kadar test edildiğinde HSV-2'nin Vero hücrelerine yapışmasının yanı sıra penetrasyonunu da önler. Bununla birlikte, enfeksiyondan plak indirgeme deneyi, içerisinde T chebula özü, chebulagic ve chebulinic asitler IC gösterdi 50 50.06 ± 6.12 değerleri, daha asiklovir daha düşük, sırasıyla 31.84 ± 2.64, ve 8.69 ± 2.09 ug / ml, (71.80 ± 19.95 ng / ml).

    Sonuçlar
    Burada sunulan sonuçlar, T. chebula özütü, chebulagic ve chebulinik asitlerin, HSV-2'ye karşı daha yüksek doğrudan antiviral aktiviteye ve asiklovire kıyasla konakçı hücrelere virüs bağlanmasını ve penetrasyonunu inhibe etme etkinliğine sahip olduğunu göstermektedir. Bununla birlikte, asiklovir, enfeksiyon sonrası virüs replikasyonunu inhibe etmek için daha güçlüdür. Bu nedenle T. chebula , cinsel yolla bulaşan HSV-2 enfeksiyonunun önlenmesine yönelik alternatif terapi geliştirmek için faydalı bir aday olabilir.


    Grafiksel özetᅟ
    Herpes simpleks virüsü-2 (HSV-2), Herpesviridae familyasına ait çift sarmallı bir DNA virüsüdür . Cinsel yolla HIV enfeksiyonu riskine katkıda bulunan genital herpes'e neden olur [ 1 , 2 ]. HSV-2 cinsel yolla bulaşan bir virüstür ve dünya çapında 500 milyon insanı enfekte eder ve yılda 20-23 milyon yeni enfeksiyon rapor edilmektedir [ 3 ], http://www.who.int/mediacentre/facts...fs400/en/#hsv2 . Virüs, nöral ganglionlarda hücre içi bir parazit olduğundan, onu tamamen ortadan kaldırmak zordur [ 1 , 4 ]. Asiklovir, valasiklovir, famsiklovir ve cidafovir gibi nükleosit türevleri, HSV enfeksiyonunun tedavisinde yaygın olarak kullanılmaktadır [ 5]. Yüksek maliyete ek olarak, asiklovir ve diğer ilgili ilaçlarla tedavi, ilaca dirençli suşların ortaya çıkmasıyla da ilişkilidir [ 6 ], bu bağışıklık sistemi baskılanmış bireylerde, bu tür diğer fırsatçı Cinsel Yolla Bulaşan Enfeksiyonlarla (CYBE'ler) birlikte enfekte olan önemli bir engeldir. HIV-1 olarak [ 7 , 8 ].

    Tıbbi bitkilerden elde edilen doğal ürünler, viral enfeksiyona karşı farklı etki modları sergileyen yeni biyolojik olarak etkili bileşiklerin önemli bir kaynağı olmuştur [ 9 - 11 ]. Terminalia chebula Retz. ( T. chebula ), Combretaceae ailesinin yaprak dökmeyen çiçekli bir ağacıdır ve geleneksel tıpta yaygın olarak kullanılmaktadır. Farmakolojik çalışmalar, T. chebula'nın insan immün yetmezlik virüsü tip 1 (HIV-1), herpes simpleks virüs-1 (HSV-1), sitomegalovirüs (CMV) ve influenza gibi viral enfeksiyonlar üzerindeki inhibitör aktivitesini ortaya koymuştur [ 12 - 16 ]. Ek olarak, T. chebula'dan elde edilen ekstraktayrıca anti-bakteriyel, anti-fungal, anti-kanserojen, anti-oksidan, anti-diyabetik ve anti-aging aktivitelerine sahiptir [ 17 ]. T. chebula , tanenler, flavonoidler, steroller, amino asitler, fruktoz, reçineler ve sabit yağ vb. Gibi çeşitli fitokonstitüentlere sahiptir. çeşitli fitokimyasallar [ 18 , 19 ]. T. chebula ekstraktının ve bileşenlerinin, yani chebulagic asitin [ 15 , 20 , 21 ] anti-HSV-1 aktivitesi üzerine birkaç çalışma olmasına rağmen , bunların HSV-2'ye karşı aktivitelerinin ele alınması gerekir.

    Yukarıdakiler ışığında , T. chebula'nın meyvelerinden hazırlanan% 50 etanolik özüt , doğrudan anti-viral aktivite ve HSV-2'nin Vero hücrelerine bağlanması ve penetrasyonu üzerindeki etkisi açısından değerlendirildi. T. chebula'dan elde edilen chebulagic ve chebulinic asitler de bu tahlillerde test edildi ve bunların aktiviteleri iyi bilinen ilaç olan asiklovir ile karşılaştırıldı. Ek olarak, ekstrakt ve saf bileşikler ayrıca enfeksiyon sonrası plak azaltma deneyinde in vitro anti-HSV-2 aktivitesi açısından değerlendirildi.

    Yöntemler
    Bitki materyali,% 50 etanolik ekstrakt ve bileşiklerin hazırlanması
    Terminalia chebula'nın meyveleri, Ayurveda Araştırma Enstitüsü, Poojappura, Kerala'nın şifalı bitkiler bahçesinden toplandı ve kimlik, Kerala, Trivandrum, Ayurveda Araştırma Enstitüsü'nde doğrulandı. Kupon numunesi (HLL / 04/2013), HLL Lifecare Limited, Trivandrum, Kerala, Hindistan'ın Doğal Ürünler Bölümünde tutulmuştur. Havada ve gölgede kurutulmuş meyveler öğütüldü ve 30 ağ gözünden (0.5 mm) süzüldü. İnce öğütülmüş toz (24 g), hızlandırılmış Solvent Ekstraktör (ASE 150, Dionex Inc., Sunnyvale, CA, ABD) kullanılarak esasen daha önce tarif edildiği gibi basınçlı ardışık ekstraksiyona tabi tutuldu [ 22 , 23]. Kısaca, malzeme diyatomlu toprak ile 4: 1 oranında karıştırıldı. Karışım bir numune hücresine (100 mi) yerleştirildi ve ASE 150 sistemine yüklendi. Ekstraksiyon, 2 statik döngü kullanılarak% 60'lık bir yıkama hacmi ile 60 ° C'de basınç altında (1500 psi)% 50 etanol kullanılarak gerçekleştirildi. Çözücü daha sonra bir döner buharlaştırıcıda (Büchi Labortechnik AG, 9230 Flawil, İsviçre) buharlaştırıldı. Kurutulan ekstrakt tartıldı ve daha ileri çalışmalar için kullanıldı.

    Her ikisi de T. chebula'dan saflaştırılmış oldukça saf ticari chebulagic asit ve chebulinik asit MP Biomedicals, Ohio, Solon, ABD'den elde edildi. Bu bileşikler, T. chebula'nın meyvelerinden hazırlanan% 50 etanolik ekstraktaki karşılık gelen zirveleri tanımlamak için referans standardı olarak kullanıldı.ve ayrıca aşağıda tarif edildiği gibi çeşitli deneylerde anti-HSV-2 aktivitesini belirlemek. Her iki bileşik de mutlak etanol (10 mg / ml) içinde çözüldü ve kullanımdan önce kültür ortamında başka seyreltmeler yapıldı. Asiklovir (ticari adı asikloguanosin), Sigma-Aldrich Inc., St. Louis, MO, ABD'den satın alındı. 7 mg / ml'lik stok çözelti yapmak için dimetil sülfoksit (DMSO) içinde çözündürüldü ve kullanımdan önce çalışma konsantrasyonları hazırlamak için kültür ortamında daha da seyreltildi. Asiklovirin kullanıldığı çeşitli tahlillerde nihai DMSO konsantrasyonu <% 0.1 idi.

    Yüksek performanslı sıvı kromatografi analizi
    Bitki özütünün Ters Fazlı Yüksek Performanslı Sıvı Kromatografisi (HPLC; LC Agilent, Agilent Technologies, Boblingen, Almanya), Reverse Phase XTerra RP 18 kolon (4.6 x 250 mm, 5 μm; Waters Corporation, Milford, ABD) kullanılarak gerçekleştirildi. ve saf bileşikler (chebulagic ve chebulinik asitler) referans standartları olarak kullanılmıştır. HPLC dereceli çözücüler Merck, Mumbai, Hindistan'dan satın alındı. Kullanılan çözücü sistemi, 1 ml / dakika akış hızında su: asetonitril (80:20) içinde% 0.01 ortofosforik asitti. Zirveler 272 nm'de tespit edildi. Ekstrakt 5 mg / ml'lik bir konsantrasyonda ve standartlar mobil faz çözücü sisteminde 1 mg / ml'de hazırlandı ve analiz için her birinden 20 ul enjekte edildi. Veriler, açık laboratuvar yazılımı (Agilent Technologies) kullanılarak işlendi.

    Hücreler ve virüsler
    Afrika yeşil maymunu böbrek hücreleri (Vero hücreleri), National Center of Cell Science, Pune, Hindistan'dan elde edildi ve Dulbecco'nun% 10 fetal sığır serumu (FBS; Biological Industries, Kibbutz beit HaemeK, İsrail) ve bir antibiyotik-antimikotik kokteyl [Penisilin (100 ünite / ml), Streptomisin (100 μg / ml) ve Amfoterisin B (250 ng / ml); Pen-Strep-Ampho sol, Biological Industries]. HSV-2 G suşu için (VR-734; ATCC, Rockville, ABD) üretimi, Vero hücre kültürü,% 5 CO içeren nemlendirilmiş bir atmosferde 37 ° C 'de muhafaza edilmiştir 2 . HSV-2 soy 25 cm çoğaltıldı 2 CO 37 ° C'de 72 saat boyunca doku kültür şişesi 2 enfeksiyon çokluğu 0.01 PFU / hücre (MOI) [kuvöz24 ]. Üç donma / çözme döngüsünden sonra, süpernatan, daha önce tarif edildiği gibi [ 24 ] Plak Oluşturma Birimi (PFU) temelinde titre edildi ve kullanılana kadar -80 ° C'de alikotlar halinde saklandı.

    Sitotoksisite deneyi
    % 50 etanolik T. chebula ekstraktı, chebulagic asit, chebulinik asit ve asiklovirin sitotoksisitesi, MTT [3- (4,5-dimetiltiyazol-2-il) -2,5-difeniltetrazolium bromid; Sigma-Aldrich Inc.] deneyi [ 25 ]. Kısaca, Vero hücreleri (1.25 x 10 4 / çukurcuk) 96-iyi hücre kültür plakalarının (Greiner Bio-One, GmbH Frickenhausen, Almanya) tohumlandı ve% 5 CO nemli bir atmosferde 37 ° C 'de bir gece boyunca yetiştirilir 2 . 24 saat sonra, hücreler çeşitli konsantrasyonlarda T. chebula ile işleme tabi tutuldu.48 saat boyunca araç [dimetil sülfoksit (DMSO) ve / veya etanol] kontrolü ile birlikte iki kopya halinde ekstre, chebulagic asit, chebulinik asit ve asiklovir. Negatif kontrol, yalnızca ortam içeren hücreleri içermiştir. İnkübasyondan sonra, kuyucuk başına 20 μl MTT (50 mM PBS'de 5 mg / ml) eklenmiş ve 4 saat boyunca 37 ° C'de inkübe edilmiş, ardından MTT solventi eklenmiştir (100 μl / kuyucuk; mutlak izopropanol içinde 0.04 N HCl) . Absorbans (OD), mikroplaka spektrofotometre (ELX 800MS; BioTek Instrument Inc., Vermont, ABD) kullanılarak 630 nm'de referans filtre ile 540 nm'de okundu. Yüzde canlılık, muamele grubunda elde edilen OD'nin, ilgili araç kontrolündeki OD'ye 100 ile çarpılmasıyla hesaplandı.

    T. chebula , chebulagic asit ve chebulinik asit ekstresinin anti-HSV-2 aktivitesi
    Doğrudan anti-viral aktivite analizi

    HSV-2'nin% 50 etanolik T. chebula ekstresi, chebulagic asit ve chebulinic asit ile doğrudan inaktivasyonunu değerlendirmek için , HSV-2 virüsü (100 PFU), T. chebula ekstresi, chebulagic asitin alt toksik seri konsantrasyonları ile önceden inkübe edildi. , chebulinik asit ve asiklovir 37 ° C'de 1 saat süreyle. Daha sonra, muhteva Vero hücreleri altında 1 saat süreyle 37 ° C'de inkübasyon ile takip bir 24-yuvalı hücre kültürü plakasının (Corning Incorporated Costar, NY, ABD) içinde büyüyen tek-tabakalı birleşene ilave edildi,% 5 CO nemlendirilmiş 2atmosfer. Virüs adsorpsiyonundan sonra, süpernatan aspire edildi ve enfekte hücreler, iki kez serumsuz DMEM ile yıkandı ve% 1 düşük erime noktalı (LMP) agaroz örtücü ortam ile kaplandı. 48 saat inkübasyondan sonra hücreler,% 10 formaldehit (50 mM PBS içinde) ile sabitlendi,% 0.2 kristal viyole ile boyandı ve plak sayısı sayıldı. Yüzde plak azalması 100 - [( P T / P C ) × 100] olarak hesaplandı , burada P T ve P Csırasıyla bileşiğin varlığında ve yokluğunda plakların sayısına atıfta bulunulmaktadır. Direkt antiviral aktivite, araçla muamele edilmiş virüs kontrolüne kıyasla plak azalması ile ölçüldü. Bileşiğin minimum konsantrasyonu, (IC plak sayıları% 50 inhibe etmek için gereken 50 özü / bileşiklerin doz-yanıt eğrilerinin regresyon analizi ile hesaplandı).

    HSV-2 bağlanma ve penetrasyon testi
    Bağlanma ve penetrasyon tahlilleri, daha önce tarif edildiği gibi [ 26 , 27 ] küçük değişikliklerle gerçekleştirildi. Kısaca, bağlanma deneyi için, 24 oyuklu hücre kültürü plakalarında büyütülen birleşik Vero hücreleri, 1 saat boyunca 4 ° C'de önceden soğutuldu. Ortam aspire edildi ve Vero hücrelerine değişen konsantrasyonlarda% 50 etanolik T. chebula özütü, chebulagic asit, chebulinik asit ve asiklovir varlığında veya yokluğunda virüs (100 PFU / çukur) ilave edildi ve 4 ° C'de 3 saat inkübe edildi. ° C. IC belirlemek için doğrudan anti-viral aktivitesi deneyinde tarif edildiği gibi Daha sonra hücreler, düz DMEM ortamı ile iki kez yıkanmış, ve işlenmiştir 50. Penetrasyon deneyinde HSV-2 virüsü (100 PFU / oyuk), bağlanmaya izin vermek için 24 oyuklu kültür plakasında 3 saat 4 ° C'de büyüyen Vero hücrelerinin önceden soğutulmuş birleşik tek katmanına eklendi. Ortam, değişen konsantrasyonlarda test özütü / bileşikleri içeren önceden ısıtılmış taze ortam ile değiştirildi ve virüs penetrasyonunu en üst düzeye çıkarmak için 37 ° C'de inkübe edildi. 30 dakika sonra, enfekte olmuş tek tabakalı kültürler, nüfuz etmemiş virüsleri etkisiz hale getirmek için 1 dakika boyunca ılık PBS (pH 3.0) ile muamele edildi. Serumsuz ortamla üç kez yıkandıktan sonra hücreler,% 1 LMP agaroz ile kaplandı ve yukarıda tarif edildiği gibi 48 saat inkübasyondan sonra plak sayısını ölçmek için işlendi.

    Enfeksiyon sonrası virüs plak azaltma deneyi
    % 50 etanolik T. chebula özütü, chebulagic asit, chebulinik asit ve asiklovirin anti-HSV-2 aktivitesi, enfeksiyon sonrası plak azaltma testi kullanılarak değerlendirilmiştir [ 28 ]. Kısaca, Vero hücreleri (8 x 10 4 / çukur),% 5 CO içeren nemlendirilmiş bir atmosferde 37 ° C'de 24-çukurlu bir hücre kültürü plakaya döllenmiş ve inkübe edildi 2 tam tek katman oluşturmak için. İnkübasyondan sonra ortam uzaklaştırılmış ve hücreler,% 5 CO nemlendirilmiş bir atmosferde 37 ° C 'de 1 saat boyunca HSV-2 virüsü (100 PFU / göz) ile enfekte edildi 2 . Virüs adsorpsiyonundan sonra, viral inokül, hücrelerin iki kez taze serumsuz DMEM ile yıkanmasıyla çıkarıldı ve hücreler, değişen konsantrasyonlar (hesaplanan CCT. chebula , chebulagic asit ve chebulinik asitten elde edilen% 50 etanolik ekstraktın 50 değerleri) . Pozitif kontrol olarak asiklovir kullanılmış ve test bileşiklerini hazırlamak için kullanılan uygun çözücüler (DMSO / etanol) içeren agar kaplaması araç kontrolünü içermektedir. 48 saat inkübasyondan sonra plakalar işlendi ve plak sayısı sayıldı.

    istatistiksel analiz
    Değerler, ikili olarak gerçekleştirilen üç / dört bağımsız deneyin ortalama ± standart hata ortalaması olarak ifade edilir. CC belirlenmesi için 50 ve IC 50 değerleri, konsantrasyon-tepki eğrileri doğrusal olmayan regresyon GraphPad Prism 4 (GraphPad Software Inc., CA, ABD) kullanılarak elde edildi. T. chebula ekstresi, chebulagic asit, chebulinik asit ve asiklovir varlığında plakların azalmasındaki istatistiksel anlamlılık, tek yönlü ANOVA ile belirlendi ve p  <0.05 istatistiksel olarak anlamlı kabul edildi. Çeşitli tedavi grupları arasındaki önem, Tukey post-hoc testi kullanılarak daha fazla analiz edildi.

    Sonuçlar
    T. chebula ekstresi, chebulagic asit ve chebulinic asit, güçlü doğrudan anti-viral aktivite gösterdi.
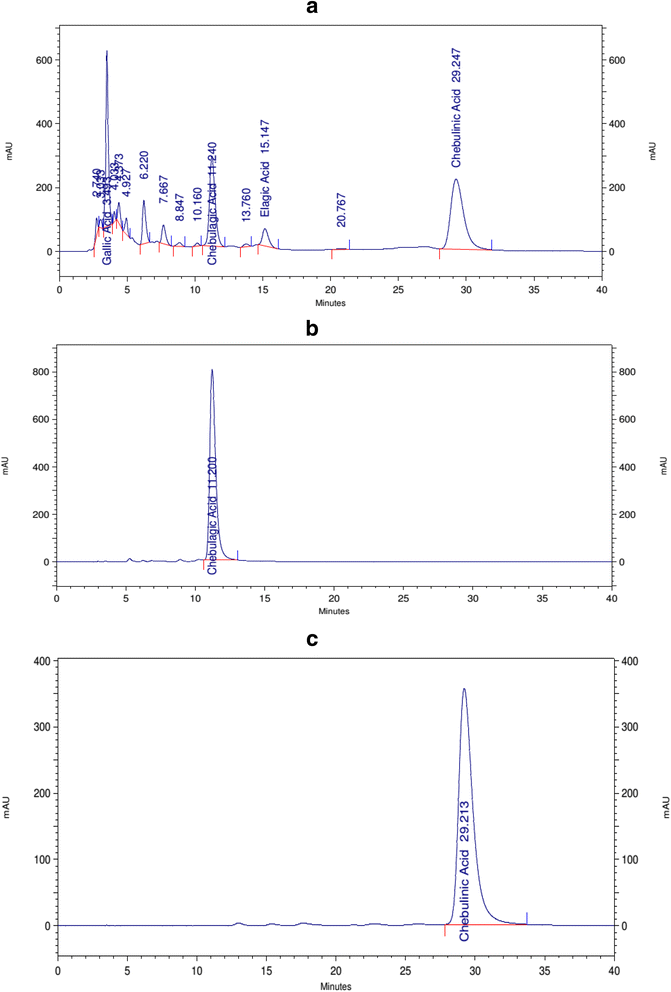
    T. chebula'nın meyvelerinden% 50 etanolik özüt, Yöntemlerde anlatıldığı gibi hazırlandı . 24 g tozdan,% 50 etanolik özütün ortalama verimi 15 g idi (% 62.5 verim). Ters fazlı HPLC ile T. chebula özütünün analizi, birden fazla pik ortaya çıkardı, ayrıca chebulagic asit ve chebulinik asit, sırasıyla 11.2 ve 29.2 dakikalık bir tutma süresi ortaya çıkardı (Şekil 1 ). Bu iki ana zirveye ek olarak, 3.4 dakikalık tutma süresine sahip zirve, gallik aside karşılık geldi (Şekil 1 ). Şekil 1
    T. chebula , chebulagic asit ve chebulinik asit meyvelerinden hazırlanan% 50 etanolik ekstraktın HPLC profilleri . T. chebula (100 μg), chebulagic asit (20 μg) ve chebulinik asit (20 μg) meyvelerinden hazırlanan ham ekstrakt , Yöntemler'de tarif edildiği gibi RP 18 kolon kullanılarak ters fazlı HPLC ile çözüldü . X ekseni zamanı (dakika) ve Y ekseni 272 nm'deki voltajı (mAU) temsil eder. Kullanılan solvent asetonitril: 'H 2 O (20: 80 hacim / hacim),% 0.01 ortofosforik asit ile takviye edilmiştir. bir % 50 etanolik ekstre meyvelerinden elde T. chebula , b chebulagic asit ve ( c) kebulinik asit. Panel ( a ) 'da gallik aside karşılık gelen tepe , gallik asit standardı çalıştırılarak belirlendi (veriler gösterilmemiştir)

    Tam boyutlu resim
    T. chebula'nın meyvelerinden veya chebulagic asit ve chebulinik asit bileşiklerinden hazırlanan% 50 etanolik ekstraktın anti-HSV-2 aktivitesini değerlendirmeden önce , bunların Vero hücrelerinin canlılığı üzerindeki etkileri, Metotlarda açıklandığı gibi MTT testi ile belirlendi . T. chebula ekstresi 409.71 ± 47.70 μg / ml CC 50 değeri ortaya koydu (Tablo 1 ). Chebulagic ve chebulinic asitler, 200 μg / ml'ye kadar test edildiğinde>% 95 hücre canlılığı gösterdi. CC 50 351,85 ± 48.80 değeri ug / ml asiklovir (Tablo gözlendi 1 ).

    Tablo 1 Vero hücrelerinde T. chebula , chebulagic asit, chebulinik asitler ve asiklovir meyvelerinden hazırlanan% 50 etanolik ekstraktın HSV-2'ye karşı sitotoksisite ve doğrudan antiviral aktivitesi Tam boy tablo
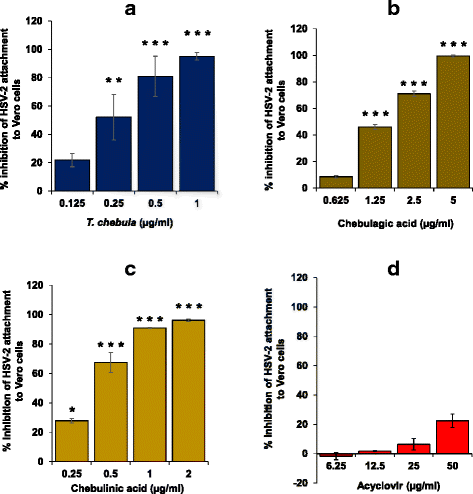
    Virüsün doğrudan etkisizleştirilmesiyle anti-HSV-2 aktivitesi, ham özüt / bileşiklerin varlığında test edildi. HSV-2 virüsü, değişen konsantrasyonlarda T. chebula ekstresi, chebulagic asit, chebulinik asit ve asiklovir ile ön işleme tabi tutulmuş ve ardından Metotlar'da tarif edildiği gibi plak oluşumu yoluyla Vero hücrelerini enfekte etme yeteneklerinin analizi yapılmıştır . Bitki ekstresi ile HSV-2'nin ön işlem, chebulagic asit gibi chebulinic asit IC ile araçla tedavi edilen virüs kontrol grubu ile karşılaştırıldığında plakların oluşumunda önemli bir azalma gösterdi 50 1.41 ± 0.51, 0.01 ± 0.0002 değerleri ve sırasıyla 0,06 ± 0,002 μg / ml (Tablo 1). Birbirlerine göre yukarıdaki tedavi gruplarının diferansiyel anti-HSV-2 aktivitesi, tek yönlü ANOVA kullanıldığında anlamlı değildi. Doğrudan bir antiviral faaliyet T. chebula özü, chebulagic asit ve chebulinic asit olduğu, yaklaşık 20 asiklovir kat daha yüksektir 2900 (IC 50  = 29.04 ± 1.04 ng / ml, Tablo 1 ). T. chebula ekstresi, chebulagic asit ve chebulinic asit, HSV-2 bağlanmasını ve Vero hücrelerine nüfuz etmesini etkili bir şekilde inhibe etti.


    Ayrıca T. chebula ekstraktı, chebulagic asit, chebulinik asit ve asiklovirin etkisi de Metotlar'da tarif edildiği gibi HSV-2'nin Vero hücrelerine bağlanması ve penetrasyonu üzerinde değerlendirildi . T. chebula özü, chebulagic asit ve chebulinic asit önemli ölçüde inhibe nitro IC ile birlikte, doza bağlı bir şekilde, Vero hücrelerine HSV-2'nin bağlanma 50 0.48 ± 0.20 değerlerine, 1.66 ± 0.30, ve 0.29 ± 0.01 ug / ml olarak sırasıyla araçla muamele edilmiş virüs kontrolüne kıyasla (Şekil 2). Vero hücrelerine HSV-2 bağlanmasının inhibisyonu için bitki özütü, chebulagic asit ve chebulinik asit tedavi grupları arasındaki farklar, tek yönlü ANOVA analizi ile önemliydi. Ayrıca, Tukey post-hoc testi ile yapılan analiz, chebulinik asit ile bağlanma deneyinde anti-HSV-2 aktivitesinin, chebulagic asitten önemli ölçüde daha yüksek olduğunu ortaya çıkarmıştır. Asiklovir, 50 ug / ml'lik bir konsantrasyona kadar test  edildiğinde, HSV-2'nin Vero hücrelerine bağlanmasında, DMSO ile muamele edilmiş negatif kontrol ile karşılaştırıldığında gözlemlenen plak sayısının ortaya koyduğu gibi, herhangi bir önemli ( p > 0.05) inhibisyon göstermedi (Şekil . 2 ). Ayrıca Vero hücrelerinin 10 μg / ml T. chebula ile ön işleme tabi tutulması Ekstrakt, chebulagic asit & chebulinic asit ve 1 μg / ml asiklovir ve ardından HSV-2 ile enfeksiyon, araçla tedavi edilen hücrelere kıyasla viral plakların sayısında önemli bir azalma göstermedi, bu da yukarıdaki ekstraktın / bileşiklerin konakçı hücre reseptörleri üzerinde herhangi bir inhibe edici etki (veriler gösterilmemiştir).
    İncir. 2


    T. chebula ekstresi, chebulagic asit, chebulinik asit ve asiklovirin HSV-2'nin Vero hücrelerine yapışmasını inhibe etme etkinliği . HSV-2 (100 PFU) virüsü, çeşitli T. chebula özütü, chebulagic asit, chebulinik asit ve asiklovir konsantrasyonları ile birlikte , 4 ° C'de 24 oyuklu plakalara ekilmiş ve işlenmiş önceden soğutulmuş Vero hücreleri ile 3 saat süreyle inkübe edildi. Yöntemlerde tarif edildiği gibi virüsün bağlanmasındaki inhibisyon için . Y ekseni, araçla muamele edilmiş virüs kontrol grubuna göre plak sayısındaki yüzde inhibisyonu temsil eder. Değerler, ikili olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'i olarak ifade edilir. Çeşitli paneller ( a ) T. chebula'nın ekstresi , bchebulagic asit, c chebulinik asit ve ( d ) asiklovir. * p  ≤ 0.05, ** p  ≤ 0.01 ve *** p  ≤ 0.001, özüt / bileşiğin ilgili konsantrasyonunda tedavi edilen ve araç kontrolü arasında

    Tam boyutlu resim
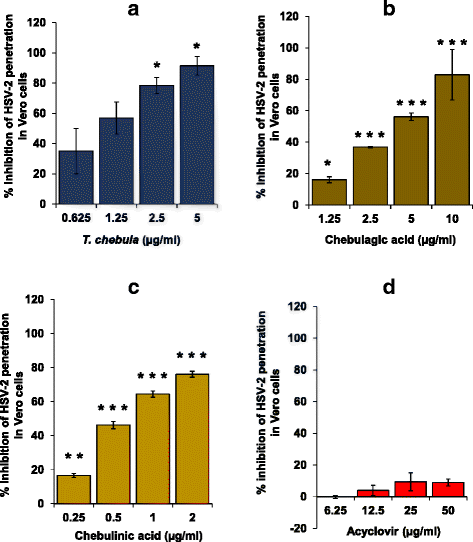
    Bağlanma deneyine ek olarak, aynı zamanda ile Vero hücrelerinde HSV-2 penetrasyon, konsantrasyon bağımlı bir önemli ölçüde inhibe ettiği görülmüştür T. chebula IC ile özü, chebulagic asit ve chebulinic asit 50 0.99 ± 0.52 ug / ml, 4.65 değerlerine Araçla muamele edilmiş virüs kontrolüne göre sırasıyla ± 0,02 μg / ml ve 0,68 ± 0,05 μg / ml (Şekil 3). Vero hücrelerinde HSV-2 penetrasyonunun inhibisyonu için bitki özütü, chebulagic asit ve chebulinik asit tedavi grupları arasındaki farklar, tek yönlü ANOVA analizi ile önemliydi. Tukey post-hoc testi ile verilerin daha fazla analizi, bitki özü veya chebulinik asit işleme grupları açısından chebulagic asit işleme grubu arasında önemli farklılıklar ortaya koydu. Bununla birlikte, bitki özütü ile chebulinik asit muamele grubu arasında önemli bir fark gözlenmedi. Bağlanma deneyinde olduğu gibi, penetrasyon deneyindeki chebulinik asit de en yüksek anti-HSV-2 aktivitesi gösterdi. Asiklovir (50 μg / ml),  benzer deneysel koşullar altında HSV-2'nin Vero hücrelerine penetrasyonunda herhangi bir önemli ( p > 0.05) azalma göstermedi (Şekil 3 ). Şekil
    3


    T. chebula ekstresi, chebulagic asit, chebulinik asit ve asiklovirin HSV-2'nin Vero hücrelerine penetrasyonunu inhibe etme etkinliği . 24 kuyucuklu kültür plakasında büyüyen Vero hücrelerinin önceden soğutulmuş birleşik tek tabakası 4 ° C'de 3 saat süreyle HSV-2 (100 PFU) ile inkübe edildi ve ardından T. chebula ( a ) özütünün değişen konsantrasyonları ile inkübe edildi , Virüs penetrasyonuna izin vermek için 37 ° C'de 30 dakika süreyle chebulagic asit ( b ), chebulinik asit ( c ) ve asiklovir ( d ), ardından Yöntemlerde açıklandığı gibi plak oluşumunun değerlendirilmesi. Değerler, araçla muamele edilmiş virüs kontrolü ile karşılaştırıldığında plak sayısında yüzde inhibisyon olarak ifade edilir. Her çubuk, ikili olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'ini temsil eder. * p  ≤ 0.05, ** p  ≤ 0.01 ve *** p  ≤ 0.001, özüt / bileşiğin ilgili konsantrasyonunda tedavi edilen ve araç kontrolü arasında

    Tam boyutlu resim

    T. chebula ekstresi, chebulagic asit ve chebulinic asit, enfeksiyon sonrası plak azaltma testinde asiklovire kıyasla azalmış anti-HSV-2 aktivitesi gösterdi.
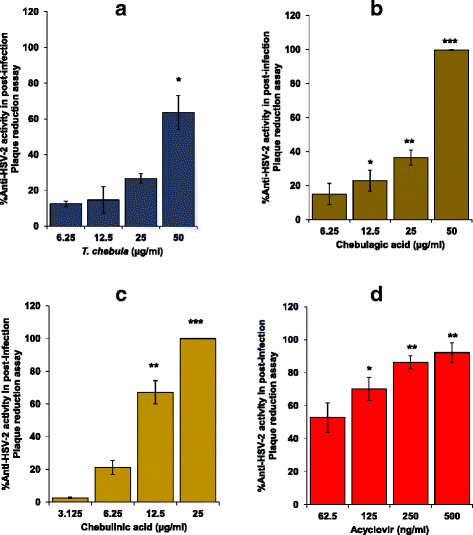
    Enfeksiyondan plak indirgeme tahlilinde, asiklovir bir IC ile HSV-2 replikasyonu bağımlı önemli inhibisyon doz gösterdi 50 71.80 ± 19.95 değerine ng / ml (Şekil. 4 ). Bununla birlikte, özü (IC 50  = 50.06 ± 6.12 ug / ml) chebulagic olarak (IC olarak 50  = 31.84 ± 2.64 ug / ml) ve chebulinic (IC 50  = 8.69 ± 2.09 ug / ml), yaklaşık 120-700 kat daha düşük göstermiştir ASİTLER IC 50 değerleri enfeksiyon sonrası plak indirgeme deneyi (Şekil l'de asiklovir ile karşılaştırıldığında. 4). Tukey post-hoc testini kullanarak, chebulinik asit, bitki özü ve chebulagic asit ile karşılaştırıldığında önemli ölçüde daha yüksek anti-HSV-2 aktivitesi gösterdi. Bununla birlikte, anti-HSV-2 aktivitesi, bitki özü ile chebulagic asit arasında önemli ölçüde farklı değildi. Şekil 4

    T. chebula ekstraktı, chebulagic asit, chebulinik asit ve asiklovirin enfeksiyon sonrası plak azaltma testinde anti-HSV-2 aktivitesi . 24 oyuklu kültür plakasında tek katman olarak büyüyen Vero hücreleri, HSV-2 (100 PFU / oyuk) ile enfekte edildi , ardından T. chebula'nın % 50 etanolik özütünün değişen konsantrasyonunu içeren% 1 düşük erime noktalı agaroz örtücü ortam , chebulagic asit, şebulinik asit ve asiklovir. 48 saat inkübasyondan sonra plakalar, Yöntemler bölümünde açıklandığı gibi plak sayısını değerlendirmek için işlendi.. Y ekseni, araçla muamele edilmiş virüs kontrol grubuna göre plak sayısındaki yüzde inhibisyonu temsil eder ve X ekseni, test özütü / bileşiklerinin konsantrasyonunu temsil eder. Her çubuk, ikili olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'ini temsil eder. Çeşitli paneller bir ekstresi T. chebula, b chebulagic asit, c chebulinic asit ve d asiklovir. * p  ≤ 0.05, ** p  ≤ 0.01 ve *** p  ≤ 0.001, test edilen ekstrakt / bileşik konsantrasyonunda tedavi edilen ve araç kontrolü arasında sırasıyla

    Tartışma
    Bu çalışmada, T. chebula'nın meyvelerinden hazırlanan% 50 etanolik ekstraktın HSV-2'ye karşı çok güçlü bir doğrudan antiviral aktiviteye sahip olduğunu gösterdik (Tablo 1 ). T. chebula tohumlarından hazırlanan sulu ekstrenin influenza A (H3N8) virüsü üzerindeki doğrudan anti-viral aktivitesi de rapor edilmiştir [ 16 ]. Terminalia arjuna Linn'in kabuğundan izole edilen hidrolize edilebilir bir tanen olan casuarinin de 25 μM konsantrasyonda HSV-2'ye karşı güçlü virüsidal aktivite gösterdi [ 29 ]. İki hidrolize edilebilir tanen, yani chebulagic asit ve T. chebula'dan saflaştırılmış chebulinik asit tarafından gözlemlenen doğrudan anti-viral aktiviteHSV-2'ye karşı ilk kez rapor edildiğinde, casuarinin daha yüksek olduğu görülüyor. T. chebula ekstraktı, chebulagic asit ve chebulinik asidin doğrudan anti-viral aktivitesi de  HSV enfeksiyonunun tedavisinde kullanılan iyi bilinen bir ilaç olan asiklovirden önemli ölçüde ( p <0.05) daha yüksekti. T. chebula'nın doğrudan anti-viral aktivitesininekstrakt, chebulagic asit ve chebulinik asit, viral yüzey glikoproteinleri ile etkileşimlerinden, işlevinde değişikliğe neden olarak veya virüs partiküllerini inert hale getirerek ve bunların Vero hücrelerine bağlanmasını ve yayılmasını önleyerek olabilir. Gerçekte, chebulagic asit ve punicalagin gibi hidrolize edilebilir tanenlerin, çeşitli virüslerin glikoproteinlerine bağlandığı, böylece bunların konakçı hücrelere girişini engellediği ve hücreden hücreye yayılmayı önlediği gösterilmiştir (20, 21).

    HSV, glikoproteinlerinin (gB, gC, gD, gH ve gL) konak hücre reseptörleri (heparan sülfat, nektin-1 ve nektin-2) ile etkileşime girmesini ve ardından füzyon işlemiyle membrana nüfuz etmesini gerektirir [ 30 , 31 ]. T. chebula ekstresi, chebulagic asit ve chebulinik asit, HSV-2 bağlanmasının (Şekil 2 ) yanı sıra Vero hücrelerine nüfuz etmenin (Şekil 3 ) güçlü inhibisyonunu göstermiştir . Casuarininin, viral glikoproteinlerin rahatsızlıkları yoluyla HSV-2'nin Vero hücrelerine bağlanmasını ve penetrasyonunu geniş ölçüde inhibe ettiği gösterilmiştir [ 29 ]. T. chebula'nın meyvelerinden izole edilen hidrolize edilebilir tanenler olan chebulagic asit ve punikalajinHSV-1 viral partiküllerini inhibe etti ve bunların bağlanmasını, penetrasyonunu ve hücreden hücreye yayılmasını ve ikincil enfeksiyonu önledi [ 20 ]. Bununla birlikte, konukçu hücrelerin chebulagic asit ve punikalajin ile ön-muamelesi, HSV-1 enfeksiyonunun önlenmesinde etkili olmamıştır. İnhibitör aktiviteleri, konakçı hücre yüzeyi glikozaminoglikanları ile etkileşimi bloke ederek bağlanma ve membran füzyonunda yer alan HSV-1 glikoproteinlerini hedef aldı. Heparan sülfat ve kondroitin sülfat eksikliği olan mutant hücre dizilerinde chebulagic asit ve punikalajinin antiviral aktivitesi önemli ölçüde azalmıştır, bu da bu tanenlerin HSV-1 glikoproteinlerinin viral membranın parçalanması yerine heparan sülfat / kondroitin sülfat ile etkileşimine müdahale edebileceğini düşündürmektedir [ 20 ]. MuhtemelenT. chebula özütü, chebulagic asit ve chebulinik asit ayrıca, konak hücre reseptörlerine bağlanmasından sorumlu olan HSV-2 glikoproteinlerini hedef alır. Asiklovirin, HSV-2'nin konakçı hücrelere bağlanmasında ve ayrıca penetrasyonunda herhangi bir önemli düşüş gösterememesi, öncelikle virüs replikasyonunu inhibe ederek hücre içi olarak çalışmasından kaynaklanıyor olabilir.

    Bu çalışmada gösterilen sonuçlar, T. chebula'nın meyvelerinden% 50 etanolik özütün hazırlandığını ortaya koymuştur., chebulagic asit ve chebulinic asit de füzyon sonrası HSV-2 replikasyonunu inhibe etti veya asiklovire kıyasla yaklaşık 120-700 kat daha düşük olan diğer hücrelere yayıldı. Chebulagic asit ve chebulinik asidin büyük moleküler ağırlığı göz önünde bulundurulduğunda, Vero hücrelerine nüfuz etmeyebilirler ve dolayısıyla hücre içi virüs replikasyonuna müdahale etmeyebilirler. Aksine, asiklovir hücrelere girecek ve HSV-2 replikasyonunu inhibe edecektir. Asiklovir, virüsle enfekte olmuş hücrelerde, viral kodlu timidin kinaz kullanılarak asiklovir monofosfata ve ardından, virüs DNA sentezini ve dolayısıyla viral DNA polimerazını inhibe ederek replikasyonu önleyen konakçı hücre enzimleri kullanılarak asiklovir trifosfata dönüştürülür [ 32 ]. Muhtemelen T. chebulaekstrakt, chebulagic asit ve chebulinik asit, enfekte Vero hücre yüzeyinde eksprese edilen viral glikoproteinlere bağlanarak hücreden hücreye yayılma için bunların kullanılamaz hale gelmesine neden olur. Bununla birlikte, T. chebula özütünün, chebulagic asitin ve chebulinik asidin enfeksiyon sonrası plak azaltma deneyinde anti-HSV-2 aktivitesi sergilediği makul mekanizmayı anlamak için daha fazla çalışmaya ihtiyaç duyulacaktır .

    T. chebula meyvesi Triphala'nın önemli bileşenlerinden biridir - Ayurveda'nın geleneksel Hint sisteminde kolon temizleyici, sindirim, idrar söktürücü ve müshil olarak yüzyıllardır kullanılan önemli bir bitkisel preparattır [ 33 ]. T. chebula'nın meyvelerinden veya bileşenlerinden hazırlanan özüt , antioksidan ve serbest radikal temizleme aktivitesi, antikarsinojenik aktivite, hepatoprotektif aktivite, kardiyoprotektif aktivite, sitoprotektif aktivite, antidiyabetik aktivite, antibakteriyel, fungal ve viral aktivite dahil olmak üzere çeşitli farmakolojik aktiviteler göstermiştir. gasterointestinal motilite iyileştirme ve anti-ülserojenik aktivite vb. [ 17 , 34 - 38]. Asetilkolinestraz inhibitör aktivitesi, antioksidan ve antiinflamatuvar etkileri göz önüne alınarak, alzheimer hastalığının tedavisi için potansiyeli de araştırılmaktadır [ 39 ]. İlginç bir şekilde, chebulagic asidin in vivo antiviral özelliği, ölümcül dozda insan enterovirüs 71 (küçük çocuklarda el, ayak ve ağız hastalığının başlıca nedensel ajanı) ile tehdit edilen farelerin tedavi edilmesiyle de gösterildi, bu da mortaliteyi ve klinik viral replikasyonu inhibe eden semptomlar [ 40 ]. Başka bir çalışmada, T. chebula'dan hazırlanan ekstraktRetz, asiklovir ile birlikte uygulandığında, deri lezyonu gelişimini önemli ölçüde azalttı ve HSV-1 ile enfekte olmuş farelerin ortalama hayatta kalma oranını, asiklovir veya tek başına bitkisel özüt verildiği zamana kıyasla uzattı [ 15 ]. Bu çalışmalar, T. chebula'nın çeşitli rahatsızlıklar için muazzam klinik potansiyelini göstermektedir . Akla gelen soru T. chebula bazlı bitkisel preparatların güvenliği ile ilgili . T. chebula meyvelerinin etanolik özütü, bakteriyel mutasyon deneylerinde test edildiği gibi herhangi bir mutajenik özellik göstermedi ve ayrıca sıçanlarda tekrar tekrar oral yoldan uygulandığında herhangi bir toksik etki ortaya koymadı [ 41 ]. Aşağıdakilerden saflaştırılan hidrolize edilebilir tanenlerin anti-mutajenik aktivitesiT. chebula başka bir bağımsız çalışma tarafından da gösterilmiştir [ 42 ]. T. chebula'dan elde edilen meyveler kurşun ve almunyum kaynaklı genotoksisiteyi azaltabilir [ 38 ]. Bu çalışmalar, T. chebula ekstraktının ve hidrolize edilebilir tanenlerin HSV'ye karşı terapötik ajanlar olarak kullanılacak güvenli moleküller olduğunu göstermektedir. Aksine, asiklovir ile uzun süreli tedavinin bilinen bir yan etkisi nefrotoksisitedir [ 43 ]. Bununla birlikte, T. chebula özütü nefroprotektif aktiviteye sahiptir [ 44 ]. Kullanımı T. chebulaekstrakt, chebulagic ve chebulinik asitler, cinsel yolla bulaşan HSV-2'nin prognozunu iyileştirmenin yanı sıra cinsel yolla bulaşan HIV-1'in ko-enfeksiyon olarak azaltılmasını sağlayabilir. T. chebula özütü, Hepatit C, HIV ve dang virüsleri gibi konakçıya giriş kapısı olarak glikozaminoglikan kullanan virüslere karşı da faydalı olacaktır. Bununla birlikte, ilaca dirençli virüsler için terapötik potansiyelinden yararlanmak için kapsamlı araştırmalara ihtiyaç vardır.

    Sonuçlar
    Bildiğimiz kadarıyla , T. chebula'nın anti-HSV-2 aktivitesini ilk kez gösterdik . Asiklovirden daha yüksek olan T. chebula özütü, chebulagic asit ve chebulinik asidin bağlanmasının yanı sıra HSV-2'ye karşı güçlü doğrudan antiviral aktivitesi nedeniyle , bu bitki doğal ürünleri tanımlamak için iyi bir kaynak olabilir. Bununla birlikte, T. chebula ve bileşenlerinin anti-HSV-2 aktivitesi sergilediği mekanizmayı belirlemek için ek çalışmalar gerekecektir .

    Kısaltmalar
    ASE: Hızlandırılmış solvent çıkarıcı CC 50 : % 50 sitotoksik etki gösteren konsantrasyon CMV: Sitomegalovirüs DMEM: Dulbecco'nun değiştirilmiş Eagle's ortamı DMSO: Dimetil sülfoksit FBS: Fetal sığır serumu HIV: İnsan bağışıklık eksikliği virüsü HPLC: Yüksek Performanslı Sıvı Kromatografi HSV: Uçuk virüsü IC 50 : Plak oluşumunda% 50 azalma sağlayan inhibe edici konsantrasyon LMP: Düşük erime noktası MOI: Çok sayıda enfeksiyon MTT: 3- (4,5-dimetiltiyazol-2-il) -2-5-difeniltetrazolyum bromür PFU: Plak oluşturma ünitesi STI: Cinsel yolla bulaşan enfeksiyon

    Referanslar
    1.
    1. Brugha R, Keersmaekers K, Renton A, Meheus A. Genital herpes enfeksiyonu: bir inceleme. Int J Epidemiol. 1997; 26: 698–709.

      CAS makale PubMed Google Scholar
    2. 2.
      Severson JL, Tyring SK. Herpes simpleks virüsleri ile insan immün yetmezlik virüsü enfeksiyonları arasındaki ilişki. Arch Dermatol. 1999; 135: 1393–97.

      CAS makale PubMed Google Scholar
    3. 3.
      Looker KJ, Garnett GP, Schmid GP. Herpes simpleks virüsü tip 2 enfeksiyonunun küresel yaygınlığı ve insidansının bir tahmini. Bull World Health Organ. 2008; 86: 805–12.

      makale PubMed PubMed Central Google Scholar
    4. 4.
      Whitley RJ, Roizman B.Herpes simpleks virüs enfeksiyonları. Lancet. 2001; 357: 1513–8.

      CAS makale PubMed Google Scholar
    5. 5.
      Cassady KA, Whitley RJ. Alfaherpesvirüs enfeksiyonlarına yeni terapötik yaklaşımlar. J Antimicrob Chemother. 1997; 39: 119–28.

      CAS makale PubMed Google Scholar
    6. 6.
      Englund JA, Zimmerman ME, Swierkosz EM, Goodman JL, Scholl DR, Balfour HHJ. Asiklovire dirençli herpes simpleks virüsü. Üçüncü basamak bir bakım merkezinde bir çalışma. Ann Intern Med. 1990; 112: 416–22.

      CAS makale PubMed Google Scholar
    7. 7.
      Erlich KS, Mills J, Chatis P, Mertz GJ, Busch DF, Follansbee SE, ve diğerleri. Edinilmiş immün yetmezlik sendromlu hastalarda asiklovire dirençli herpes simpleks virüsü enfeksiyonları. N Engl J Med. 1989; 320: 293–6.

      CAS makale PubMed Google Scholar
    8. 8.
      Bean B. Antiviral terapi: güncel kavramlar ve uygulamalar. Clin Microbiol Rev. 1992; 5: 146–82.

      CAS makale PubMed PubMed Central Google Scholar
    9. 9.
      De Clercq E. İnsan immün yetmezlik virüsü (HIV) enfeksiyonunun kemoterapisi için güncel öncü doğal ürünler. Med Res Rev. 2000; 20: 323–49.

      makale PubMed Google Scholar
    10. 10.
      Newman DJ, Cragg GM, Snader KM. 1981–2002 döneminde yeni ilaçların kaynağı olarak doğal ürünler. J Nat Prod. 2003; 66: 1022–37.

      CAS makale PubMed Google Scholar
    11. 11.
      Kitazato K, Wang Y, Kobayashi N. Viral bulaşıcı hastalık ve antiviral aktiviteye sahip doğal ürünler. Drug Discov Ther. 2007; 1: 14–22.

      CAS PubMed Google Scholar
    12. 12.
      el Mekkawy S, Meselhy MR, Kusumoto IT, Kadota S, Hattori M, Namba T. Mısır halk ilaçlarının insan immün yetmezlik virüsü (HIV) ters transkriptaz üzerindeki inhibe edici etkileri. Chem Pharm Bull. 1995; 43: 641–8.

      makale PubMed Google Scholar
    13. 13.
      Yukawa TA, Kurokawa M, Sato H, Yoshida Y, Kageyama S, Hasegawa T, vd. Geleneksel bitkilerle sitomegalovirüs enfeksiyonunun profilaktik tedavisi. Antiviral Res. 1996; 32: 63–70.

      CAS makale PubMed Google Scholar
    14. 14.
      Badmaev V, Nowakowski M. Epitel hücrelerinin, bitki kaynaklı biyolojik yanıt değiştirici Ledretan-96 ile influenza A virüsüne karşı korunması. Phytother Res. 2000; 14: 245–9.

      CAS makale PubMed Google Scholar
    15. 15.
      Kurokawa M, Nagasaka K, Hirabayashi T, Uyama S, Sato H, Kageyama T, vd. Geleneksel bitkisel ilaçların asiklovir ile kombinasyon halinde herpes simpleks virüsü tip 1 enfeksiyonuna karşı in vitro ve in vivo etkinliği. Antiviral Res. 1995; 27: 19–37.

      CAS makale PubMed Google Scholar
    16. 16.
      Oyuntsetseg N, Khasnatinov MA, Molor-Erdene P, Oyunbileg J, Liapunov AV, Danchinova GA, et al. Deva-5 bitki formülasyonunun doğrudan antiviral aktivitesinin ve beş Asya bitkisinin ekstraktlarının influenza A virüsü H3N8'e karşı değerlendirilmesi. BMC Complement Altern Med. 2014; 14: 235.

      makale PubMed PubMed Central Google Scholar
    17. 17.
      Gupta PC. Terminalia chebula Retz'in biyolojik ve farmakolojik özellikleri . (Haritaki) - Bir genel bakış. Int J Pharm Pharm Sci. 2012; 4 (Suupl 3): 62–8.
    18. 18.
      Juang LJ, Sheu SJ, Lin TC. Terminalia chebula Retz meyvesindeki hidrolize edilebilir tanenlerin belirlenmesi . yüksek performanslı sıvı kromatografisi ve kapiler elektroforez ile. J Sep Sci. 2004; 27: 718–24.

      CAS makale PubMed Google Scholar
    19. 19.
      Kumar KJ. Coğrafi değişimin Terminalia chebula meyvelerinde tanik asit, gallik asit, kebulinik asit ve etil gallat içerikleri üzerine etkisi . Nat Prod. 2006; 2: 100–4.

      CAS Google Scholar
    20. 20.
      Lin LT, Chen TY, Chung CY, Noyce RS, Grindley TB, McCormick C, ve diğerleri. Hidrolize edilebilir tanenler (chebulagic asit ve punicalagin), herpes simpleks virüsü 1 girişini ve hücreden hücreye yayılmayı engellemek için viral glikoprotein-glikozaminoglikan etkileşimlerini hedefler. J Virol. 2011; 85: 4386–98.

      CAS makale PubMed PubMed Central Google Scholar
    21. 21.
      Lin LT, Chen TY, Lin SC, Chung CY, Lin TC, Wang GH, ve diğerleri. Giriş için glikozaminoglikan kullanan virüslere karşı chebulagic asit ve punikalajinin geniş spektrumlu antiviral aktivitesi. BMC Microbiol. 2013; 13: 187.

      CAS makale PubMed PubMed Central Google Scholar
    22. 22.
      Alonso-Salces RM, Korta E Barranco A, Berrueta LA, Gallo, B Kısmındaki polifenolik profillerin Vicente F. Belirlenmesi Bask şarabı hızlandırılmış çözücü ekstraksiyonu kullanılarak elma çeşitleri. J Agric Food Chem. 2001; 49: 3761–7.

      CAS makale PubMed Google Scholar
    23. 23.
      Benthin B, Danz H, Hamburger M. Tıbbi bitkilerin basınçlı sıvı ekstraksiyonu. J Chromatogr A. 1999; 837: 211–9.

      CAS makale PubMed Google Scholar
    24. 24.
      Blaho JA, Morton ER, Yedowitz JC. Herpes simpleks virüsü: yayılma, miktar tayini ve depolama. Curr Protoc Microbiol. 2005; Bölüm 14: Ünite 14E.1-23.

      Google Scholar
    25. 25.
      Mosmann T. Hücresel büyüme ve hayatta kalma için hızlı kolorimetrik test: proliferasyon ve sitotoksisite testlerine uygulama. J Immunol Methods. 1983; 65: 55–63.

      CAS makale PubMed Google Scholar
    26. 26.
      Cheng HY, Lin TC, Yang CM, Wang KC, Lin LT, Lin CC. Euphorbia jolkini'den Putranjivain A, in vitro herpes simplex virüs tip 2'nin hem virüs girişini hem de geç aşama replikasyonunu inhibe eder. J Antimicrob Chemother. 2004; 53: 577–83.

      CAS makale PubMed Google Scholar
    27. 27.
      Wachsman MB, Castilla V, de Ruiz Holgado AP, de Torres RA, Sesma F, Coto CE. Enterocin CRL35, in vitro olarak HSV-1 ve HSV-2 replikasyonunun geç aşamalarını inhibe eder. Antiviral Res. 2003; 58: 17–24.

      CAS makale PubMed Google Scholar
    28. 28.
      Shigeta S, Mori S, Baba M, Ito M, Honzumi K, Nakamura K ve diğerleri. Ribavirin, 5-etinil-1-beta-D-ribofuranosylimidazol-4-karboksamid ve 6 ′ - (R) -6′-C metilneplanosin A'nın çeşitli orto ve paramiksovirüslere karşı antiviral aktiviteleri. Antimicrob Agents Chemother. 1992; 36: 435–9.

      CAS makale PubMed PubMed Central Google Scholar
    29. 29.
      Cheng HY, Lin CC, Lin TC. Terminalia arjuna Linn kabuğundan casuarinin antiherpes simpleks virüsü tip 2 aktivitesi . Antiviral Res. 2002; 55: 447–55.

      CAS makale PubMed Google Scholar
    30. 30.
      Mızrak PG. Herpes simpleks virüsü: hücre girişi için reseptörler ve ligandlar. Cell Microbiol. 2004; 6: 401–10.

      CAS makale PubMed Google Scholar
    31. 31.
      Heldwein EE, Krummenacher C. Herpes virüslerinin memeli hücrelerine girişi. Cell Mol Life Sci. 2008; 65: 1653–68.

      CAS makale PubMed Google Scholar
    32. 32.
      Elion GB. Asiklovir: keşif, etki mekanizması ve seçicilik. J Med Virol. 1993; Özel Sayı 1: 2–6.

      CAS makale PubMed Google Scholar
    33. 33.
      Baliga MS. Triphala, kanseri test etmek ve önlemek için Ayurvedik formülasyon: bir inceleme. J Alternatif Kompleman Med. 2010; 16: 1301–8.

      makale PubMed Google Scholar
    34. 34.
      Hazra B, Sarkar R, Biswas, S, meyve özleri özelliklerini atma antioksidan ve reaktif oksijen türlerinin Mandal N. karşılaştırma çalışması Terminalia chebula, Terminalia belerica ve Emblica officinalis . BMC Complement Altern Med. 2010; 10:20.

      makale PubMed PubMed Central Google Scholar
    35. 35.
      Lee HS, Jung SH, Yun BS, Lee KW. Terminalia chebula Retz'den chebulic asit izolasyonu . ve izole edilmiş sıçan hepatositlerinde antioksidan etkisi. Arch Toxicol. 2007; 81: 211–8.

      CAS makale PubMed Google Scholar
    36. 36.
      Suchalatha S, Shyamala Devi CS. Terminalia chebula'nın izoproterenolün neden olduğu deneysel miyokardiyal hasara karşı koruyucu etkisi . Indian J Exp Biol. 2004; 42: 174–8.

      CAS PubMed Google Scholar
    37. 37.
      Malekzadeh F, Ehsanifar H, Shahamat N, Levin M, Colwell RR. Siyah miyrobalanın ( Terminalia chebula Retz.) Helicobactor pyroli'ye karşı antibakteriyel aktivitesi . Int J Antimicrob Agents. 2001; 18: 85–8.

      CAS makale PubMed Google Scholar
    38. 38.
      Çanta A, Bhattacharyya SK, Chattopadhyay RR. Terminalia chebula Retz'in geliştirilmesi . (Combretaceae) klinik araştırmada. Asya Pac J Trop Biomed. 2013; 3: 244–52.

      makale PubMed PubMed Central Google Scholar
    39. 39.
      Afshari AR, Sadeghnia HR, Mollazadeh H.Alzheimer hastalığında Terminalia chebula'nın potansiyel mekanizmaları üzerine bir inceleme . Adv Pharmacol Sci. 2016. doi 10.1155 / 2016/8964849 .
    40. 40.
      Yang Y, Xiu J, Liu J, Zhang L, Li X, Xu Y, ve diğerleri. Hidrolize edilebilir bir tanen olan chebulagic asit, insan enterovirüsüne karşı in vitro ve in vivo antiviral aktivite sergiledi 71. Int J Mol Sci. 2013; 14: 9618–27.

      makale PubMed PubMed Central Google Scholar
    41. 41.
      Kim JH, Koo YC, Hong CO, Yang SY, Jun W, Lee KW. Terminalia chebula'nın mutajenite ve oral toksisite çalışmaları . Phytother Res. 2012; 26: 39–47.

      makale PubMed Google Scholar
    42. 42.
      Kaur S, Grover IS Singh M, gelen hidroliz tanenler Kaur S. Antimutagenicity Terminalia chebula içinde Salmonella thyphimurium . Mutat Res. 1998; 419: 169–79.

      CAS makale PubMed Google Scholar
    43. 43.
      Gunness P, Aleksa K, Bend J, Koren G.Asiklovir kaynaklı nefrotoksisite: asiklovir aldehit metabolitinin rolü. Transl Res. 2011; 158: 290–301.

      CAS makale PubMed Google Scholar
    44. 44.
      Rao NK, Nammi S. Terminalia chebula Retz kloroform ekstresinin antidiyabetik ve renoprotektif etkileri . streptozotosin ile indüklenen diyabetik sıçanlarda tohumlar. BMC Complement Altern Med. 2006; 6: 17.

      makale PubMed PubMed Central Google Scholar

    Referansları indir Teşekkürler


    Yeni Delhi Ulusal İmmünoloji Enstitüsü Üreme Hücresi Biyolojisi Laboratuvarı Teknik Sorumlusu Sayın Rajit Ram'a kültür ortamının hazırlanmasında ve hücre kültürü tesisinin bakımında yardım sağladığı için teşekkür ederiz. Ayrıca, Tukey post-hoc testi kullanılarak verilerin analizinde yardım için Yeni Delhi, Hindistan Tüm Hindistan Tıp Bilimleri Enstitüsü Biyoistatistik Bölümü Başkanı Prof. RN Pandey'e de teşekkür ederiz. Finansman


    Bu çalışma, Biyoteknoloji Departmanı (BT / PR5691 / MED / 108/11/2012), Hindistan Hükümeti ve Hindistan Tıbbi Araştırma Konseyi (5/7/853/12-RCH), Hükümet tarafından sağlanan araştırma hibeleri ile mali olarak desteklenmiştir. Hindistan. SKG, Hindistan Hükümeti, Bilim ve Mühendislik Araştırma Kurulu, Bilim ve Teknoloji Bölümü tarafından JC Bose Bursunu (SB / S2 / JCB-040/2015) takdir etmektedir. Yazarlar tarafından ifade edilen görüşler, fon sağlayan kurumların görüşlerini yansıtmak zorunda değildir. Veri ve materyallerin mevcudiyeti


    T. chebula Retz'in meyvelerinden hazırlanan% 50 etanolik özüt, hediye çeki örneği olarak saklandı (HLL / 04/2013 ) ve Natural Products Division, HLL Lifecare Limited, Trivandrum, Kerala, Hindistan'dan temin edilebilir. Yazar katkıları


    AK, antiviral tahlilleri gerçekleştirdi ve verileri istatistiksel olarak analiz etti. KPS ve RN bitki materyalini topladı, ham özü hazırladı ve HPLC ile analiz etti. AA ve NNM deneysel çalışmaya katıldı ve makale yazımına yardımcı oldu. SKG çalışmayı denetledi, sonuçları yorumladı ve taslağı yazdı. Tüm yazarlar buna göre katkıda bulunmuş ve son makaleyi onaylamıştır. Çıkar çatışması


    Yazarlar, rakip çıkarları olmadığını beyan ediyorlar. Yayın izni


    Uygulanamaz. Etik onayı ve katılma onayı


    Uygulanamaz. Yazar bilgileri

    Üyelikler
    1. Üreme Hücresi Biyolojisi Laboratuvarı, Ulusal İmmünoloji Enstitüsü, Aruna Asaf Ali Marg, Yeni Delhi, 110 067, Hindistan

      Ajay Kesharwani, Aakanksha Agarwal, Nripendra Nath Mishra ve Satish Kumar Gupta
    2. Kurumsal Ar-Ge Merkezi, HLL Lifecare Limited, Akkulum, Thiruvananthapuram, Kerala, 695017, Hindistan

      Suja Kizhiyedath Polachira ve Reshmi Nair
    3. Şimdiki Adresi: Anatomi ve Hücre Biyolojisi, Tıp Fakültesi, Saarland Üniversitesi, Homburg, Saar, Almanya

      Ajay Kesharwani
    Sorumlu yazar


    Satish Kumar Gupta'ya Yazışma . Haklar ve izinler


    Açık Erişim Bu makale, herhangi bir ortamda sınırsız kullanım, dağıtım ve çoğaltmaya izin veren Creative Commons Attribution 4.0 Uluslararası Lisansı ( http://creativecommons.org/licenses/by/4.0/ ) hükümleri altında dağıtılmaktadır. orijinal yazar (lar) a ve kaynağa uygun şekilde atıfta bulunun, Creative Commons lisansına bir bağlantı sağlayın ve değişiklik yapılıp yapılmadığını belirtin. Creative Commons Public Domain Dedication feragatnamesi ( http://creativecommons.org/publicdomain/zero/1.0/ ), aksi belirtilmedikçe bu makalede sunulan veriler için geçerlidir.

    Yorum yap


    • #3
      KARA Halile, Karahalile, Terminalia chebula


      Yorum yap


      • #4
        Alzheimer Hastalığında Terminalia chebula'nın Potansiyel Mekanizmaları Üzerine Bir İnceleme

        Amir R. Afshari , 1 Hamid R. Sadeghnia , 1 , 2 ve Hamid Mollazadeh 2 , *
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
        Git: Soyut
        Alzheimer hastalığının (AD) mevcut yönetimi, sonuçlar tamamen olumlu olmasa da, asetilkolinesteraz inhibitörleri (AChEI'ler) ve NMDA reseptör antagonistlerine odaklanmaktadır. Bu nedenle, bitkisel bitkilerde bulunan yeni ajanlar, olası terapötik alternatifler olarak dikkat çekmektedir. Terminalia chebula (Aile: Combretaceae) geniş bir tıbbi özellik yelpazesine sahip tıbbi bir bitkidir ve hidrolize edilebilir tanenler, fenolik bileşikler ve flavonoidler gibi çeşitli biyokimyasallar içerdiği rapor edilmiştir, bu nedenle iyi bir terapötik alternatif olduğu kanıtlanabilir. Bu araştırmada, çeşitli veri tabanlarında bulunan yayınlanmış bilimsel literatürü inceledik: PubMed, Science Direct, Scopus, Web of Science, Scirus ve Google Scholar, anahtar kelimelerle: T. chebula, AD, nöroproteksiyon, şifalı bitki, antioksidan, ellagitannin, gallotannin, gallik asit, chebulagic asit ve chebulinik asit. Bu derleme, T. chebula özütlerinin ve bileşenlerinin AChEI ve antioksidan ve anti-inflamatuar etkilere sahip olduğunu ve bunların tümü şu anda Alzheimer hastalığının tedavisi ile ilgili olduğunu göstermektedir.

        Git: 1. Giriş
        Alzheimer hastalığı (AH), 2015 yılında Alzheimer Derneği'nin tahminlerine göre ABD'de yaklaşık 5 milyon demans vakasını oluşturan geriatrik popülasyonda nörodejeneratif hastalığın önde gelen nedenidir. Yaşın ilerlemesiyle hastalık insidansı arttığından, AD geliştirme riski, 65 yaşından başlayarak her 5 yılda bir ikiye katlanır. Gelişmiş ülkelerde artan yaşlı nüfus göz önüne alındığında, gelecekteki AD prevalansı tahminleri 2050 yılına kadar dört kat artış göstermektedir. Sonuç olarak, AD, artan yüksek sağlık hizmeti nedeniyle önemli bir ekonomik sağlık yükü haline gelmiştir. maliyetler, morbidite ve mortalite, ücret ve üretkenlik kaybı nedeniyle aile üyeleri ve bakıcılar üzerindeki mali yükten bahsetmiyorum bile [ 1 ].

        AD'nin patogenezi çok karmaşıktır, ancak tipik olarak serebral atrofi, postmortem ve görüntüleme çalışmalarında açıkça görülmektedir. Kombine kortikal, limbik ve subkortikal patoloji, AD'ye özgü demansa yol açar. Klasik mikroskobik özellikler arasında nörofibriler yumaklar ve yaşlılık plakları bulunur. Ayrıca, AD'nin klinik özellikleri genellikle dil bozukluğu, hafıza kaybı, görsel-uzaysal bozulma ve zayıf muhakeme gibi psikopatolojik belirtilerle karakterize edilir [ 24 ].]. Ek olarak, AD'de özellikle bazal ön beyinde çeşitli nörotransmitterlerde kademeli bir kayıp vardır. AD'de en erken ve en belirgin şekilde etkilenen kolinerjik iletimdir. Bazal ön beyindeki nükleus bazalis, süreçte nispeten erken etkilenir ve AD hastalarının omurilik sıvısındaki ve beynindeki asetilkolin seviyeleri, hastalığın ilerlemesi ile hızla azalır. Bu gerçek, asetilkolin azalmasının AD hastalarında gözlemlenen bilişsel gerileme ile sonuçlandığına dair kolinerjik hipotezi desteklemektedir .

        AD'yi tedavi etmek için halihazırda mevcut olan ilaçların çoğu asetilkolinesteraz inhibitörleridir (AChEI'ler): takrin [ 4 ], rivastigmin [ 5 ], donepezil [ 6 ] ve galantamin [ 7 ]; ancak ne yazık ki bu ilaçların hepsinin sınırlı etkinliği ve yan etkileri vardır [ 4 ]. Öte yandan, tıbbi bitkiler özellikle psikiyatrik ve nörolojik bozuklukların tedavisinde hastalık tedavisinde önemli bir rol almaya başlıyor. Bunun bir nedeni geleneksel tedavilerden hoşnutsuzluk, diğeri ise hastaların sağlıkla ilgili kararları üzerinde daha fazla öz kontrol arayışında olmalarıdır [ 8 ].

        İlaçların gelişigüzel ve aşırı kullanımı, maliyetleri, yan etkileri ve etkileşimleri nedeniyle bitkisel ilaçlar, düşük maliyetleri, bulunabilirliği ve daha az ilaç etkileşimi nedeniyle hastalıkları tedavi etmek için uygun bir alternatif olabilir gibi görünmektedir [ 9 ]. Bu nedenle, nörodejeneratif bozuklukları tedavi etmek için şifalı bitkilerden yeni bir farmakoterapi arayışı önemli ölçüde ilerlemiştir ve bitkisel ilaçların AD tedavisinde önemli bir rolü olduğunu gösteren birkaç çalışma ve belge bulunmaktadır [ 10 – 12 ]. Özel bir bitkisel ilaç, Terminalia chebula'dır.Rez. (Combretaceae), polifenoller, terpenler, antosiyaninler, flavonoidler, alkaloidler ve glikozitler gibi çok sayıda ve farklı fito-bileşen türleri nedeniyle. Geleneksel tıpta, tıbbi özelliklerinden sorumlu çeşitli kimyasal olarak aktif bileşikleri tutan T. chebula'nın meyveleri , antik çağlardan beri Unani, Ayurveda ve homeopatik tıpta geriatrik hastalıkları tedavi etmek, hafıza ve beyin fonksiyonlarını iyileştirmek için kullanılmıştır . 14 ]. Ayrıca kanser, kardiyovasküler hastalıklar, felç, cüzzam, ülser, gut, artrit, epilepsi, öksürük, ateş, ishal, gastroenterit, cilt bozuklukları, idrar yolu enfeksiyonu ve yara enfeksiyonları gibi çok sayıda hastalığı tedavi etmek için yaygın olarak kullanılır .]. Son araştırmalar, T. chebula'nın diyabet [ 17 ], bakteri ve mantar enfeksiyonları [ 18 , 19 ], immün yetmezlik hastalıkları [ 20 , 21 ], hiperlipidemi [ 22 ], karaciğer hastalıkları [ 15 , 23 ], mide tedavisinde etkili olduğunu göstermektedir. ülser [ 24 ] ve yaralar [ 25 ]. T. chebula'nın diğer farmakolojik özellikleri ve faydalı etkileri şurada özetlenmiştir:tablo 1. tablo 1


        T'nin yapısı ve farmakolojik özellikleri . chebula aktif maddeler.
        Gallotaninler hidrolize edilebilir tanen Antimikrobiyal [ 26 ], antioksidan [ 27 ]

        ellagitanninler hidrolize edilebilir tanen Anti-inflamatuar,
        antikanser,
        kardiyovasküler koruma [ 28 ],
        antioksidan,
        kemopreventif,
        antiapoptotik,
        anti-hepatoselüler karsinom (Anti-HCC) [ 29 ]

        gallik asit fenolik bileşik Antiinflamatuar [ 30 ], antimutajenik [ 31 ],
        kardiyoprotektif [ 32 ],
        antioksidan [ 33 ],
        antikanser [ 34 ],
        antimikrobiyal [ 35 ], nöroprotektif [ 36 ],
        immünosupresif [ 37 ],
        gelişmiş biliş [ 38 ]

        şebulik asit fenolik bileşik Anti-HCV [ 39 ],
        antidiyabetik [ 40 ], hepatoprotektif [ 41 ],
        immünosupresif [ 37 ]

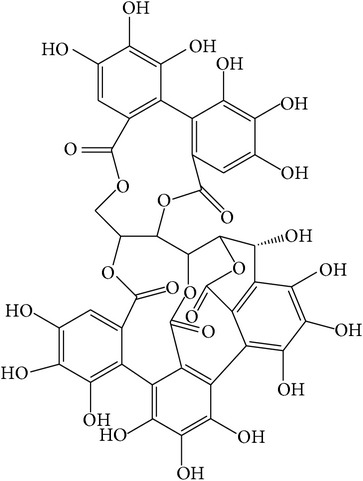
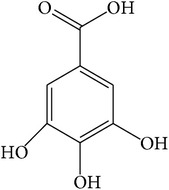
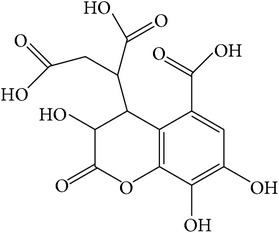
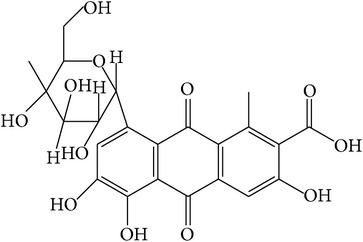
        şebulajik asit hidrolize edilebilir tanen [IMG2=JSON][][/IMG2] Hepatoprotektif [ 41 ], antiviral [ 42 ],
        immünosupresif [ 43 ], antidiyabetik [ 44 , 45 ], nöroprotektif [ 46 ], antianjiyogenez [ 47 ], antiproliferatif [ 48 ], anti-inflamatuar [ 44 ]

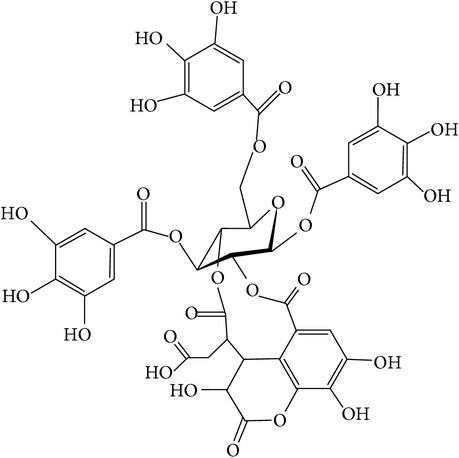
        şebulinik asit hidrolize edilebilir tanen Antisekretuar, sitoprotektif [ 49 ], antianjiyogenez [ 50 ],
        antitümör [ 51 ]

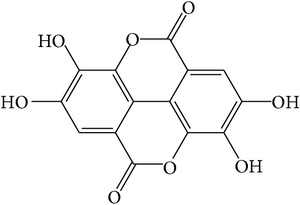
        ellagik asit fenolik bileşik Antioksidan [ 52 ], anti-inflamatuar [ 53 ], anti-diyabet kaynaklı cinsel işlev bozukluğu [ 54 ], hepatoprotektif [ 55 ], antiaritmik [ 56 ], bilişsel güçlendirici [ 57 , 58 ]

        antrakinon glikozitler fenolik bileşik Nöroprotektif [ 59 ], antidiyabetik [ 60 ]
        Ayrı bir pencerede aç
        Bu nedenle, bu derleme makalesi , Alzheimer hastalığının tedavisinde yeni bir alternatif olarak bu bitkiye dikkat çekmek için T. chebula'nın farmakolojisi ve fitokimyası ile AD'nin ilerlemesi ve tedavisi üzerindeki etkileri hakkında yayınlanmış literatürü özetlemeyi amaçlamaktadır .

        Git: 2. Terminalia chebula Retzius
        terminalia chebulaRetzius (Ailesi: Combretaceae) 250 türü olan bir gölge ve süs ağacı olarak Ortadoğu ve Hindistan, Çin, Tayland gibi tropikal bölgelerde yetişen tıbbi bir bitkidir. 25 metre boyuna kadar büyüyebilir ve değişken bir görünüme ve yayılan dallara sahiptir. Kabuğun rengi koyu kahverengidir ve genellikle çatlaktır. Yapraklar ince, eliptik-dikdörtgen, tabanda kordiform, elips şeklinde, 7-12 cm uzunluğunda ve 4-6,5 cm genişliğinde olup, tüm kenarları olan kösele bir forma sahiptir. Yaprakların üst yüzeyi, alttaki yüzeye göre tüysüzdür. Çiçekler beyazdan sarımsı renge ve hoş olmayan bir kokuya sahiptir. Çiçeklerin 5-7 cm uzunluğunda, basit veya dallı, yaklaşık 4 mm çapında sivri uçları vardır. Yumurtalık 10 stamen ile daha düşüktür. Meyveler olgunlaştıklarında sarı ila turuncu-kahverengidir ve 2.5-5 cm uzunluğundadır ve oval-drupe şeklindedir [15 , 61 ].

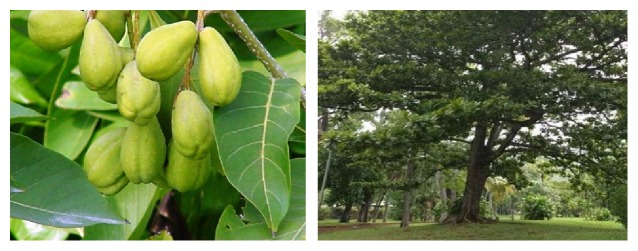
        Ayrıca yöre halkı tarafından çeşitli isimlerle anılmaktadır. Örneğin, bitkinin Tay dilinde ortak adı “Kot Phung Pla”, Hintçe'de ise “Kadukkaai”; ve diğer isimleri Black Myrobalan, Ink Tree veya Chebulic Myrobalan'dır (Şekil 1) [ 15 ].

        Ayrı bir pencerede aç
        Şekil 1
        T. chebula ağacı ve meyveleri. 2.1. Bilimsel sınıflandırma
        Sınıflandırması Kingdom: Plantae, Division: Magnoliophyta, Class: Magnoliopsida, Order: Myrtales, Family: Combretaceae, Genus: Terminalia ve Species: Chebula'dır [ 15 ].

        2.2. T. chebula'nın Fitokimyasal Bileşimleri
        2.2.1. Hidrolize Edilebilir Tanenler
        Tanenler, fenolik bileşiklerin bir parçası olarak, oligomeriktir ve serbest fenolik gruplara sahip çoklu yapısal birimlere sahiptir ve moleküler ağırlıkları 500 ila 3000 D arasında değişir. Tohumların meyve özü ve kurutulmuş perikarpları en yüksek miktarda tanen içerir [ 62 ] . Tanenler hidrolize olabilen ve hidrolize edilemeyen tanenlerden oluşur ve hidrolize olabilen tanenler (yani gallotaninler ve ellagitanninler) T. chebula'daki ana bileşiklerdir .

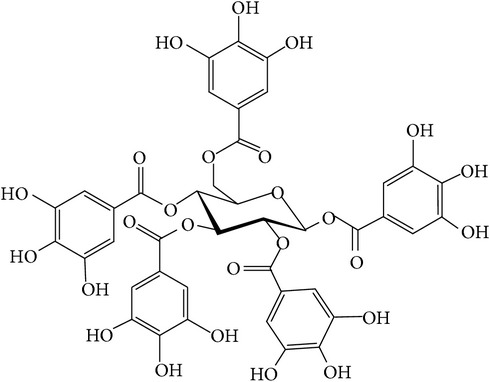
        Gallotanninler ve ellagitanninler, T. chebula [ 63 ] meyvelerinde bulunan polimerlerdir . Gallotaninler, glikoz gibi bir poliol karbonhidratın hidroksil grubu ile esterleşmiş ve bağlanmış gallik asit içerir [ 64 ]. 1,2,3,4,6-pentagalloil glikozdaki galloil gruplarında oksidatif bağlantı oluştuğunda ellagitanninler oluşur. Ellagitanninler gallotanninlerden, galloil gruplarının C-C bağları yoluyla bağlanmasıyla, gallotanninlerdeki galloil gruplarının ise depsid bağlarla bağlanmasıyla ayrılır [ 65 , 66 ].

        Bir benzopiran tanen olan Chebulagic asit, birkaç bitki familyasında yaygın olarak dağılmıştır: Combretaceae [ 67 ], Euphorbiaceae, Leguminosae, Anacardiaceae ve Fabaceae [ 31 ]. Ayrıca, Combretaceae Ailesinde, chebulagic asit, T. bellerica, T. chebula ve Emblica officinalis meyvelerinin ana bileşenidir [ 68 ].

        1,3,6-tri- O -galloyl-2,4-chebuloyl- β -D- glucopyranoside olarak da bilinen Chebulinik asit, T.chebula'nın meyvelerinde veya T. macroptera'nın yapraklarında bulunan bir ellagitannindir [ 31 , 68 ].

        2.2.2. Fenolik Bileşikler
        Fenolik bileşikler arasında, T. chebula [ 13 ] meyvelerinde bulunan doğal, güçlü bir fenolik antioksidan olan ellagik asit; hidrolize edilebilir tanenlerin bir parçası olarak bulunan bir trihidroksibenzoik asit olan gallik asit [ 69 ]; tanik asit, gallik asit molekülleri ve glikozun bir polimeri [ 70 ]; ve chebulik asit, T. chebula'nın olgun meyvelerindeki bir başka fenolik bileşik ve chebulagic asit veya chebulinik asit gibi dönüştürülmüş ellagitanninlerin bir bileşenidir [ 41 ].

        Glikozitler, Terminalia , ravent, Senna ve Aloe türlerinde yaygın olarak bulunan diğer fenolik bileşiklerdir . T. chebula meyvesinin perikarpında antrakinon glikozitler bulunur [ 71 ].tablo 1T. chebula'nın ana bileşenlerini ve kimyasal yapılarını gösterir.

        2.2.3. Çeşitli Bileşikler
        Yukarıdakilere ek olarak, palmitik [ 72 ], stearik [ 73 ], oleik [ 74 ], linoleik [ 75 ] ve araşidik asitler [ 76 ] gibi mevcut olan ve bitkinin aktivitesine katkıda bulunan başka bileşikler de vardır. ], meyve çekirdeklerinde bulunur.

        2.2.4. Arama Yöntemleri
        Bu araştırma, 1960'dan 2015'e kadar çeşitli elektronik veritabanlarında bulunan makaleleri içeriyordu: PubMed, Science Direct, Scopus, Web of Science, Scirus ve Google Scholar, arama kelimeleri kullanılarak T. chebula , AD, neuroprotection, tıbbi bitki, antioksidan , ellagitannin, gallotannin, gallik asit, chebulagic asit ve chebulinik asit. Çalışmamıza sadece T. chebula'nın AD üzerindeki etkilerini bildiren güncel makaleler dahil edildi. Ardından, AD'nin tedavisinde ve ilerlemesinde ilgili mekanizmaların karşılaştırılması ve farmakolojik etkilerin değerlendirilmesi yapıldı.

        2.3. T. chebula ve Alzheimer Hastalığı
        2.3.1. Asetil Kolinesteraz (AChE)
        AD ile ilgili hipotezlerden biri, beyin korteksinin sinaptik yarığında hafıza bozukluğuna neden olan asetilkolin (ACh) eksikliğidir. AChE veya asetil-hidrolaz olarak da bilinen asetil kolinesteraz, nörotransmiter asetilkolini hidrolize eden bir hidrolazdır. AChE esas olarak nöromüsküler kavşaklarda ve aktivitesinin sinaptik iletimi sonlandırmaya hizmet ettiği kolinerjik beyin sinapslarında bulunur. Sinir ajanları ve pestisitler gibi organofosfor bileşikleri tarafından inhibisyonun birincil hedefidir. AChE çok yüksek katalitik aktiviteye sahiptir; Her bir AChE molekülü, substratın difüzyonunun izin verdiği sınıra yaklaşarak saniyede yaklaşık 25000 ACh molekülünü bozar [ 77 ].]. Nörotransmisyon sırasında, ACh sinirden sinaptik aralığa salınır ve postsinaptik zardaki ACh reseptörlerine bağlanarak sinirden gelen sinyali iletir. Postsinaptik zarda da bulunan AChE, Ach'yi hidrolize ederek sinyal iletimini sonlandırır [ 78 ]. AChE birçok iletken doku türünde bulunur: merkezi ve periferik dokular, motor ve duyusal lifler, sinir ve kas ve kolinerjik ve kolinerjik olmayan lifler. AChE'nin aktivitesi motor nöronlarda duyusal nöronlardan daha yüksektir [ 79 ]. AChE ayrıca kırmızı kan hücresi zarlarında da bulunur [ 80 ]]. Geleneksel olarak nekroz, AD'de hücre ölümüne neden olduğu düşünülen yoldur; ancak artık ACh içeren nöronların AH'de nöronal ölümün en önemli yolu olduğu düşünülmektedir. AD'deki hücre ölüm mekanizmaları, Aβ birikimi , azaltılmış enerji metabolizması ve/veya mitokondriyal disfonksiyon, eksitotoksisite ve oksidatif stres ve serbest radikal üretimidir. Bu dört mekanizma, inme ve AD gibi çeşitli hastalıklarda nekroza katkıda bulunur. Enflamatuar yanıtlar ve bunların trofik faktör işlevi üzerindeki etkileri de AD'de hücre ölümü için ana faktör olarak öne sürülmüştür. AChE, membran depolarizasyonunu ve NMDA reseptör aktivasyonunu indükleyerek apoptotik ve nekrotik hücre ölümünü indükler ve bunun sonucunda Ca2 + akışı ve a'nın modülasyonuHipokampal kültürlerde 7 nikotinik asetilkolin reseptörü. Bu nedenle AChE'nin nörodejenerasyonda ana rolü vardır ve AChEI'ler nöroproteksiyonda etkili olabilir [ 81 – 83 ]. AChE'nin nöroprotektif formları olarak AChE'nin ek varyantlarının (R ve S) AChEI'lerle birlikte artan ekspresyonu, AD'nin ilerlemesini önlemede etkili olmuştur. Bir çalışmada, AChE-R ve AChE-S ekspresyonu, tedavi edilmeyen hastalarda 12 aylık bir süre içinde azaldı. Buna karşılık, takrin ile tedavi her iki varyantta da bir yukarı regülasyona neden olur (%117'ye kadar) [ 84 ].

        AChE'nin inhibisyonu, sinaptik yarıkta ACh birikimine yol açar ve nörotransmisyonun engellenmesiyle sonuçlanır [ 78 ]. Asetil kolinesteraz inhibitörleri (AChEI'ler), nörodejeneratif bozuklukları olan hastalarda bilişsel ve nöropsikiyatrik bozuklukların altında yatan kolinerjik açığı hafifletir. Bu nedenle, beyin AChE'sinin inhibisyonu, AD, Parkinson hastalığı, senil demans, ataksi ve miyastenia gravis için tedavi stratejilerinin başlıca terapötik hedefi olmuştur [ 85 ]. AD ile ilişkili bilişsel işlev bozukluğunu ve hafıza kaybını tedavi etmek için takrin, donepezil ve doğal ürün bazlı rivastigmin gibi bu mekanizmaya sahip birkaç sentetik ilaç vardır [ 86]. Bununla birlikte, bu bileşiklerin, gastrointestinal rahatsızlıklar ve doğal kaynaklardan daha iyi AChE inhibitörleri bulma konusundaki ilgiyi gerektiren biyoyararlanım ile bağlantılı problemler dahil olmak üzere yan etkileri olduğu bildirilmiştir [ 87 ].

        Bu bölümde T. chebula ve bileşenlerinin beyin fonksiyonları üzerindeki etkinliğini tartışıyoruz.

        2.3.2. antikolinesteraz özellikleri
        T. chebula'nın antikolinesteraz özellikleri birçok çalışmada bildirilmiştir [ 3 , 88 – 95 ]. Sancheti ve ark.'nın çalışmasında T. chebula'nın AChE ve butirilkolinesteraz (BChE) üzerindeki inhibitör etkileri bildirilmiştir. In vitro çalışmada, 5 mg/mL konsantrasyona sahip T. chebula meyvelerinin metanolik ham özütü, AChE ve BChE'yi sırasıyla yaklaşık %89 ve %95 oranında inhibe etmiştir. Sancheti et al. T. chebula'dan bir gallotanin yapısı ile 1,2,3,4,6-penta-O-galloil- β -D-glukoz (PGG) ekstrakte edildikromatografik yöntemlerle ve en güçlü AChE ve BChE inhibitörü olduğunu göstermişlerdir. PGG'nin biyo-tahlili , sırasıyla 29.9 ± 0.3  μ M ve 27.6 ± 0.2  μ M IC50 değerleriyle AChE ve BChE üzerinde konsantrasyona bağlı inhibitör aktivitesini sergiledi . Daha sonra, PGG'nin inhibitör aktivitesinin çıkarılması için, pozitif kontrol olarak takrin ile bir TLC testi yapıldı ve AChE inhibitör etkisi testte net bir şekilde görselleştirildi [ 88 ]. T. chebula'nın metanolik meyve özlerinin inhibitör etkisine ek olarakAChE üzerinde, etil asetat fraksiyonu, nispeten dikkate değer AChE inhibe edici aktivite gösterir. Süleyman et al. 1, 5, 15 ve 25 mg/mL dozlarda etil asetat fraksiyonunun AChE'yi sırasıyla %29.36, %32.44, %45.82 ve %62.32 oranında inhibe ettiğini gösterdi. Bu fraksiyon AChE inhibisyonunda kloroform ve metanolik fraksiyondan daha güçlüydü [ 91 ]. Benzer bir in vitro çalışmada, Vinutha ve ark. T. chebula meyvesinin metanolik ve sulu ekstraktlarını kullandı ve veriler, T. chebula'nın sulu ekstraktının IC50 değerlerinin (minimum inhibisyon: %12.45) metanolik ekstrakttan (minimum inhibisyon: %1.21) daha güçlü olduğunu gösterdi. [ 3 ].

        Gallotanninlerin AChE inhibisyonu üzerindeki etkilerine ek olarak, T. chebula'nın aktif bir bileşeni olarak tannik asit , AChE üzerinde potansiyel bir inhibisyon etkisine sahiptir. Upadhyay ve Singh, AChE'nin tannik asit tarafından in vivo ve in vitro yarışmalı inhibisyonunu gösterdi. Bu çalışma, T. chebula meyvesinden elde edilen tannik asidin etkilerine odaklanmıştır . 96 saat boyunca tannik asidin % 80'i LC50 ile in vivo tedavi , Lymnaea akuminatın sinir dokusunda AChE aktivitesinde dikkate değer bir inhibisyona neden oldu . Ayrıca, doku LC 50'nin %80'ine maruz kaldığında AChE aktivitesinin maksimum inhibisyonu tespit edildi.96 saat boyunca tannik asit, bu nedenle AChE'nin inhibisyonu 96 saatlik süreçte zamana ve doza bağımlıydı. In vitro tedavi, tanik asidin doza bağımlı AChE inhibisyonuna önemli ölçüde neden olduğunu gösterdi, öyle ki 0.04 mM tannik asit, L. acuminata'nın sinir dokusunda AChE aktivitesini kontrolün %37'sine düşürdü [ 92 ]. Ek olarak, AChE aktivitesi üzerine bir başka in vivo araştırma, tanik asidin Naja kaouthia zehirindeki AChE aktivitesini tamamen nötralize ettiğini gösterdi [ 96 ].

        Parle ve Vasudevan in vivo çalışmalarında Abana'nın ( T. chebula içeren tıbbi bitkilerin bir karışımı ) 15 gün boyunca 50, 100 ve 200 mg/kg dozlarda oral yoldan verilmesinin genç ve yaşlı farelerde beyin AChE aktivitesini azaltabildiğini gösterdi. . Pasif kaçınma aparatı ve labirent testleri 16. günde yapıldı ve sonuçlar, aktarım gecikmesinde kayda değer bir doza bağlı azalma ve kademeli gecikme testlerinde önemli bir artış gösterdi, bu da bellekte önemli bir gelişme olduğunu gösteriyor [ 93 ].

        Benzer bir başka çalışma Dhivya ve arkadaşları tarafından yapılmıştır. Bu in vitro çalışmada, T. chebula içeren çeşitli bitki türlerinin AChE inhibitör aktivitesinin de 41.06 ± 5.6 (0.1 mg/mL) AChE inhibisyonuna sahip olduğu rapor edilmiştir [ 95 ].

        Benzer bir çalışmada, T. chebula'nın metanolik ekstraktının AChE inhibisyonu, IC50 değeri 180 ± 14.6  μg/mL olan bir ekstrakt ile orta derecede bir inhibisyon gösterdi ve AChE inhibisyonu yüzdesi 0.1 mg/mL'de 41.06 ± 5.6 idi [ 97 ]. Ek olarak, T. chebula özündeki AChE inhibisyonunun yüzdesi %13 idi (IC50 tespit edilmedi) [ 14 ]. Ayrıca, başka bir araştırmada, T. chebula AChE aktivitesinin %89'unu (5 mg/mL) ve BChE aktivitesinin %95'ini (5 mg/mL) inhibe edebilir [ 88 ].

        T. chebula'nın meyvelerindeki fenolik bileşikler olarak gallik asit ve ellagik asit de AChE'yi inhibe edebilir. Nag ve De, çalışmalarında T. chebula'nın metanolik ekstraktının (gallik asit: 0.25  μg, ellagik asit: 0.08  μg) inhibitör etkisinin artan dozaj ( IC50 : 10.96) ile doğrusal bir ilişkiye sahip olduğunu göstermiştir [ 89 ] .

        2.3.3. Anti-inflamatuar Özellikler
        Siklooksijenaz (COX) ve 5-lipoksijenaz (5-LOX), iltihaplanma ile ilgili anahtar enzimlerdir. Reddi et al. T. chebula meyvelerinin etanolik ekstraktından bir COX-LOX ikili inhibitörü olarak chebulagic asit araştırıldı . Sonuçlar, chebulagic asidin, COX-1, COX-2 ve 5-LOX için sırasıyla 15 ± 0.288, 0.92 ± 0.011 ve 2.1 ± 0.057  μ M IC50 değerleriyle güçlü bir COX-LOX ikili inhibisyon aktivitesine sahip olduğunu gösterdi [ 76 ].

        T. chebula'nın (WFTC) suda çözünür fraksiyonu, sistemik ve lokal anafilaksiye karşı etkiliydi. Shin ve ark. 0.01-1.0 g/kg dozlarda WFTC enjeksiyonunun anafilaktik şoku %100 engellediğini gösterdi. WFTC, 0.005 ila 1.0 g/kg arasında değişen konsantrasyonlarda ön işleme tabi tutulduğunda, serum histamin seviyeleri doza bağlı olarak azaldı. Ek olarak, bu çalışma WFTC'nin anti-dinitrofenol ve IgE ile indüklenen tümör nekroz faktörü- (TNF-) α üretimini arttırdığını göstermiştir [ 98 ].

        Lee et al. yaptıkları çalışmada gallik asidin (25  μg ) nükleer faktör kappa B (NF- κ B) aktivitesini ve sitokin salınımını baskıladığını göstermiştir. Aynı zamanda, siklik AMP yanıt elemanı bağlayıcı protein/p300 (CBP/p300, bir NF-kB ortak aktifleştiricisi) gen ekspresyonunu, asetilasyon seviyelerini ve CBP/p300 histon asetiltransferaz aktivitesini önemli ölçüde azalttı . Bu nedenle, başta T. chebula olmak üzere birçok bitkinin ekstraktlarından elde edilen gallik asidin , hem in vitro hem de in vivo olarak inflamatuar hastalıkların gelişiminde NF- κ B yolunun aşağı regülasyonu yoluyla anti-inflamatuar aktivite gösterdiği gösterilmiştir [ 30 , 99 – 101 ].

        Kim et al. NF- κ B asetilasyonunun gallik asit ile inhibisyonunun, mikroglia hücrelerinde sitokin üretiminin azalmasına ve nöronal hücrelerin amiloid β - (A β -) kaynaklı nörotoksisiteden korunmasına neden olduğunu gösterdi. Ek olarak, bu araştırma , farelerde Y-labirent ve pasif kaçınma testlerinde Aβ kaynaklı bilişsel işlev bozukluğu üzerinde gallik asidin onarıcı bir etkisi olduğunu göstermiştir . Bu nedenle, gallik asidin nöroinflamatuar hastalıklarda, (1) RelA (NF- kB'yi kodlayan bir gen olarak ) asetilasyonunu ve sitokin üretimini inhibe ederek Aβ kaynaklı nöronal hücre ölümünün önlenmesi ; (2) nöronal hücreleri birincil mikroglia aracılı A β'dan korumaknörotoksisite; (3) farelerde A p'nin neden olduğu hafıza eksikliklerinin geri yüklenmesi; ve (4) beyinde RelA asetilasyonunu inhibe ederek in vivo sitokin üretiminin baskılanması [ 101 ]. Benzer bir başka çalışma, T. chebula gibi tıbbi bitkilerin polifenolik ekstraktlarının (gallik asit içeren) in vitro olarak A β agregasyonunu inhibe edebildiğini , A β üretimini azaltabildiğini ve A β nörotoksisitesine karşı koruyabildiğini göstermiştir [ 102 ]. Kim et al. NF-kB ve p38 mitojenle aktive olan protein kinaz yolakları yoluyla inflamatuar yanıtlar üzerinde gallik asidin inhibitör etkilerini bildirdiler [ 103 ].

        Başka bir çalışmada, chebulagic asit, lipopolisakkarit- (LPS) ile uyarılan RAW 264.7'de (fare makrofaj hücre çizgisi) güçlü bir anti-inflamatuar etki gösterdi. Reddy ve Reddanna, nitrik oksit (NO) ve prostaglandin E2 üretiminin inhibisyonu, iNOS (indüklenebilir nitrik oksit sentazları), COX-2, 5-LOX, TNF-'nin aşağı regülasyonu gibi farklı mekanizmalarla chebulagic asidin inflamatuar hastalıklara karşı etkinliğini göstermiştir. α , interlökin 6 ve NF- κ B üzerinde inhibitör etkiler ve nükleer p50 ve p65 protein seviyelerinde azalmalar. Ek olarak, reaktif oksijen türlerinin (ROS) üretimi ve LPS ile uyarılan RAW 264.7 hücrelerinde p38, ERK 1/2 ve JNK fosforilasyonu, konsantrasyona bağlı bir şekilde chebulagic asit tarafından baskılanmıştır [ 44 ].]. Başka bir araştırmada, T. chebula'nın olgunlaşmamış tohumlarından elde edilen chebulagic asit , farelerde kolajen kaynaklı artritin başlangıcını ve ilerlemesini önemli ölçüde bastırdı [ 104 ]. Benzer bir çalışmada, kurutulmuş T. chebula meyvesinin sulu özütü, iNOS'u [ 105 ] inhibe ederek bir anti-inflamatuar etki göstermiştir . Patil et al. yaptıkları çalışmada, T. chebula meyvesinin (500 mg/kg) iNOS ekspresyonunun inhibisyonu yoluyla verilmesinin, inflamasyonun ilerlemesinde önemli ölçüde etkili olabileceğini gösterdiler [ 106 ]. T. chebula'nın in vivo anti-inflamatuar aktivitesiFarklı dozlarda (aralık: 50 ila 500 mg/kg) meyve özütü, sıçanlarda karagenan kaynaklı iltihaplanmaya karşı değerlendirildi. Bu çalışmada, Bağ ve ark. 250 mg/kg'ın (ağızdan uygulanan) karagenan kaynaklı sıçan pençe ödeminde %69.96'lık bir azalmaya neden olduğunu bildirdi. Bu bulgu, serbest radikal söndürmenin, anti-inflamatuar aktivitesi için mekanizmalardan biri olabileceğini düşündürmektedir [ 107 ]. 1 g/kg dozunda T. chebula içeren bir Hint Ayurvedik bitkisel formülasyonu olan Triphala, bir anti-inflamatuar etki gösterdi. Sabina ve Rasool araştırmalarında, bu bitkinin anti-inflamatuar özelliklerinin mekanizmalarının (a) lizozomal enzim salınımının inhibisyonu, (b) inflamatuar aracı TNF- α'nın önemli bir azalmasını içerdiğini gösterdi.ve (c) beta-glukuronidaz ve laktat dehidrojenaz enzimlerinin salınımında bir azalma. Triphala'nın anti-inflamatuar etkisi, fenolik bileşenlerin ve flavonoidlerin varlığına bağlı olabilir [ 108 ]. Başka bir çalışmada, Ramani ve Pradhan, T. chebula meyvelerinin aseton ekstraktının, Tam Freund'un Adjuvanının neden olduğu artriti kontrol etmede önemli bir etkiye sahip olduğunu gösterdi. Bu etki, deksametazon ile karşılaştırıldığında pençe ödemi ve eklem kalınlığında (ESR değerlerinde ve RF değerlerinde azalma) iyi bir azalmaya yol açar [ 109 ].

        2.3.4. Antioksidan Özellikler
        Antioksidan savunmasındaki azalmalar veya vücuttaki oksidan durumundaki artışlar, AD gibi nörolojik dejenerasyonda önemli bir rol oynayan oksidatif stres adı verilen duruma yol açma eğilimindedir [ 110 ]. Reaktif oksijen türleri ve oksidatif stres, amiloid- β oluşumunu arttırır ve beyindeki senil plaklar AD'nin ayırt edici özelliğidir [ 111 ]. Yüksek lipid içeriği, eksik antioksidan değerler ve beyindeki yüksek oksijen tüketimi, merkezi sinir sisteminin oksidatif strese karşı savunmasız olmasının nedenleridir. Artan lipid peroksidasyonu, azalan glutatyon seviyeleri, artan dopamin döngüsü ve beyindeki yüksek demir ve alüminyum seviyeleri, Parkinson, Amyotrofik Lateral Skleroz ve AD'de oksidatif stresin rolünü destekler [ 112].

        İçindeTablo 2, AD'nin patogenezinde ve ilerlemesinde oksidatif stresin rollerini özetledik. Bu nedenle, antioksidan savunmayı güçlendirerek veya reaktif oksijen türlerinin üretimini azaltarak oksidatif stresi azaltmak AD tedavisinde etkili olabilir. Tablo 2


        Alzheimer hastalığının patogenezinde oksidatif stresin başlıca etkileri.
        protein oksidasyonu Artan protein karbonil içeriği Frontal kutup ve oksipital kutupta artan protein oksidasyonu [ 113 ]
        AD hipokampus ve alt parietal lobülde (MAL-6)/(W/S) oranının azalması, insan sinaptozomlarının ROS ile oksidasyonunun in vitro modellerinde W/S oranını azalttı [ 114 ]

        DNA oksidasyonu DNA yapısına doğrudan hasar AD'de parietal kortekste mitokondriyal DNA oksidasyonunda 3 kat artış [ 115 ] Aynı
        yaştaki kontrol deneklerine kıyasla AD'de nükleer DNA'daki oksidatif hasarda artış [ 116 ]
        DNA oksidasyonunun bir belirteci olarak 8-hidroksi-2-deoksiguanozin AD [ 117 ]

        lipid peroksidasyonu Beyin fosfolipid hasarı AD'de hipokampus, piriform korteks ve amigdalada artan TBARS seviyeleri [ 118 ] Fe- H2O2
        nedeniyle in vitro AD beyin homojenatlarının artan lipid peroksidasyonu [ 119 ] Antioksidan enzimler tarafından inhibe edilen kültürlü DS ve AD nöronlarında artan apoptoz [ 112 , 120 ] AD'de hipokampus ve alt parietal lobülde PC, PE, fosfolipid öncülleri, kolin ve etanolaminde azalma [ 121 ] AD hastalarının beyninde sitotoksik ajan olarak aldehitlerde artış [ 122 ]

        antioksidan enzimler Enzim içeriğindeki değişiklikler AD'de hipokampus ve amigdalada yüksek GSH-Px, GSSG-R ve CAT aktivitesi [ 118 ]
        Pek çok çalışma enzim aktivitesinde yükselme [ 123 , 124 ] veya aktivitede azalma [ 125 ] göstermedi

        YAŞ oluşumu Protein yapısında ve eyleminde patolojik değişiklikler Çözünür fibriller olmayan A β ve tau'nun toplanmasını hızlandırır [ 126 ]
        Ayrı bir pencerede aç
        MAL-6: zayıf hareketsizleştirilmiş proteine ​​bağlı spin etiketi; W/S: kuvvetle hareketsizleştirilmiş proteine ​​bağlı spin etiketi; TBARS: tiobarbitürik asit reaktif maddeler; DS: Down sendromu; PC: fosfatidilkolin; PE: fosfatidiletanolamin; GSH-Px: glutatyon peroksidaz; GSSG-R: glutatyon redüktaz; CAT: katalaz; YAŞ: gelişmiş glikasyon son ürünleri.

        T. chebula özütünün (100  μg/mL) antioksidan etkileri, kersetin, gallik asit ve t-butilhidrokinon gibi referans radikal süpürücülerle karşılaştırıldı ve T. chebula özütü , IC50 2.2  μg /mL ile %95 aktivite gösterdi [ 14 ]. Yüksek fenolik bileşen içeriğine sahip T. chebula ve T. arjuna gibi Terminalia türleri, güçlü antioksidan ve yaşlanma karşıtı özellikler göstermiştir [ 88 ]. T. arjuna'nın sulu ekstrelerinin oral uygulamasısüperoksit dismutaz, katalaz ve glutatyon S-transferaz gibi antioksidan enzimlerin aktivitelerinde önemli artışa neden olur. Terminalia türlerinin sulu ekstraktının güçlü antioksidan etkisi, AD gibi yaşa bağlı hastalıkların tedavisinde rol oynayabilir [ 127 ]. Mathew ve Subramanian tarafından yapılan benzer bir çalışma, T. chebula (0.1 mg/mL) ve IC50'nin metanolik ekstraktının antioksidan aktivitesinin sırasıyla % 86,3 ve 0,5  μg /mL olduğunu göstermiştir. Bu çalışmada 20 bitki arasında en yüksek antioksidan aktivite miktarı T. chebula'da bulunmuştur.gallik asit ve ellagik asit varlığı nedeniyle. Bu çalışmada kullanılan 20 bitkinin tamamı uzun yıllardır kullanılan geleneksel nöroprotektif bitkilerdi ve aralarında T. chebula en güçlü antioksidan ve AchE'nin orta düzeyde inhibisyonuydu [ 97 ]. T. chebula meyvelerinin hidroalkolik ekstraktının artritik bozukluklarda antioksidan, antiinflamatuar, membran stabilize edici ve antilipid peroksidatif etkilerinin değerlendirilmesinde Bag ve ark. sıçanlarda karagenan kaynaklı iltihaplanmada T. chebula'nın (10 ila 100  μg/mL) meyve özütünün, IC50 94.96 mg/kg ile karaciğerde tiyobarbitürik asit reaktif maddelerin oluşumunu azalttığını gösterdi. IC 50özütün DPPH radikal süpürme aktivitesindeki miktarı 42.14  μg /mL'dir [ 107 ]. T. chebula'nın antilipid peroksidatif kapasitesi, daha yüksek fenolik içeriğe, indirgeme kabiliyetine, Fe(II) şelatlama kabiliyetine ve serbest radikal süpürücü aktiviteye bağlandı. Khan ve arkadaşlarının çalışmasında, sarı T. chebula ve siyah T. chebula'nın sulu ekstraktları , DPPH radikalinin temizlenmesinde 20.24 ± 0.9  μg/mL ve 17.33 ± 1.1  μg /mL IC50 değerleri gösterdi . fare beyinleri, sırasıyla [ 128 ]. fenolik bileşiklerin ve triterpenoid bileşenlerinin biyolojik aktivitelerini araştırmak için yapılan bir in vitro çalışmadaT. chebula , 9 fenolik bileşik ve 8 triterpenoid ekstrakte edildi. Fenolik bileşiklerin radikal süpürücü aktiviteleri, triterpenoid bileşiklerden daha yüksekti ve 10 μM konsantrasyonda melanogeneze karşı güçlü inhibitör aktivitelere sahipti  ve IC50 , 1.4–10.9 μM idi  . Bu sonuçlar, T. chebula'nın yüksek içeriğe sahip olduğunu gösterdi. polifenolik bileşenler güçlü bir antioksidandı [ 16 ]. T. chebula'nın kurutulmuş meyve özü ekstresi (600 mg/kg), sıçanlarda antioksidan etkilerle (serbest radikal süpürücü, antioksidan enzimler aktiviteyi arttıran ve lipid peroksidasyonunu azaltan) asetik asit kaynaklı koliti azaltabilir [ 129 ].

        Nöroprotektif etkilerin değerlendirilmesinde, H2O2'nin neden olduğu PC12 hücre ölümünün T. chebula tarafından inhibisyonu araştırıldı. 12 saat boyunca 40  μ M'de H2O2 hücre canlılığını %59'a düşürdü. Ayrıca, T. chebula'nın tüm metanol, su ve %95 etanol özleri , doza bağlı olarak hücre canlılığını 0,5–5.0 μg/mL'de arttırdı  ; ve bunların arasında su özü daha güçlüydü. Ekstraktların antioksidan etkileri karşılaştırıldı ve sonuçlar metanol ekstraktının luminol-H2O2 bazında iyi bir antioksidan aktiviteye sahip olduğunu gösterdi .-yaban turpu peroksidaz tahlili ve su özütünün, kuprik sülfat fenantrolin - H2O2 ve luminol-H202 tahlillerinde iyi antioksidan aktivitelere sahip olduğu gösterilmiştir . Ayrıca, %95 etanol özütü, pirogallol-luminol tahlilinde [ 130 ] iyi antioksidan aktivite gösterdi . T. chebula'nın etkileribeyin kaynaklı nörotrofik faktör (BDNF), Cu, Zn-süperoksit dismutaz (SOD1) ve Mn-süperoksit dismutaz (SOD2) üzerindeki tohum ekstreleri, Park ve diğerleri tarafından değerlendirildi. Geçici serebral iskemi indüksiyonundan 7 gün önce gerbillere günde bir kez 100 mg/kg dozda ekstrakt uygulandı ve ekstraktın nöroprotektif etkisi iskemi-reperfüzyon indüksiyonundan sonraki dördüncü günde CA1 hipokampal bölgede değerlendirildi. Sonuçlar, araçla tedavi edilen gruba kıyasla iskemik grupta astrositlerin ve mikroglia'nın önemli ölçüde azaldığını ve araçla tedavi edilen iskemi grubuna kıyasla nöron çekirdeğinin (pozitif nöron olarak) belirgin şekilde bol olduğunu (%62) gösterdi (%62'ye karşı %12,2) ). SOD1, SOD2 ve BDNF'nin protein seviyeleri ve aktivitesi, tedavi edilen grupta çok daha yüksekti. Bu sonuçlar, nöroprotektif etkileri doğruladı.T. chebula , hipokampustaki nöronal hasara karşı özütler [ 131 ]. Son zamanlarda, T. chebula meyvelerinin alkollü ekstraktının oksidatif stres parametrelerini hafifleterek kinolinik asit kaynaklı nörotoksisiteye karşı önemli ölçüde koruduğunu bulduk (yayınlanmamış veriler).

        Birçok çalışmada , oksidasyon hasarı ve yaşlanmanın çeşitli modellerinde oksidatif stresin olumsuz etkilerini modüle etmek için T. chebula kullanılmıştır [ 132 – 134 ]. T. chebula , genç albino sıçanlara kıyasla yaşlı sıçanların karaciğer ve böbreklerinde yaşlanmaya bağlı olarak antioksidan savunmayı artırabilir ve oksidatif stresi modüle edebilir [ 133 ] ve hepatositleri oksidatif stres ve artan toplam tiyol içeriği nedeniyle oluşan hasardan koruyabilir [ 41 ]. Birçok çalışma, çeşitli in vivo ve in vitro modellerde T. chebula'nın antioksidan aktivitesini göstermiştir [ 16 , 135 , 136]. Ek olarak, araştırmacıların çoğu, "çok sayıda -OH grubu (polifenoller gibi) içeren farmakoforun, daha az sayıda -OH grubuna sahip olanlardan daha fazla yaşlanma karşıtı özelliklere sahip olduğu" hipotezine katılıyor. Bu nedenle, güçlü fenolik bileşikler olan iki bileşen, ellagik asit ve ellagik asidin 4-O-ksilositidir. Bu aktif bileşenler, normal insan fibroblast hücrelerinde serbest radikal süpürücü, elastaz inhibisyonu, matris metalloproteinaz-1 (MMP-1) ekspresyonu ve tip I kollajen sentezi üzerindeki aktiviteleri açısından araştırıldı. Bu nedenle, ellagik asit geriatrik popülasyon için faydalı olabilir [ 137 , 138 ].

        T. chebula'nın antioksidan aktivitesi ve oksidatif stresin AD patogenezindeki önemli rolü ile ilgili yukarıda bahsedilen noktalara göre , bu bitkinin kullanımının AD'nin ilerlemesine karşı etkili olabileceği sonucuna varabiliriz.

        Git: 3. Sonuç
        Alzheimer hastalığı, güçten düşüren bir bunamadır ve hastalığın belirtilerini değiştirmek için şu anda yalnızca sınırlı sayıda terapötik seçenek mevcuttur. T. chebula demans tedavisi ile ilgili farmakolojik aktivitelere sahiptir (şekil 2). T. chebula'dan elde edilen farklı ekstraktlar , AChE ve BChE üzerinde konsantrasyona bağlı inhibitör aktiviteler sergilemiştir. Bu tür AChE aktiviteleri, PGG, gallik asit, ellajik asit ve tannik asit gibi aktif bileşenleri için de tarif edilmektedir. T. chebula'nın anti-inflamatuar özellikleri, chebulagic veya gallik aside atfedilebilecek farklı deney sistemlerinde iyi belgelenmiştir. Yüksek fenolik bileşen içeriğine sahip T. chebula , in vitro ve in vivo olarak güçlü antioksidan ve nöroprotektif özellikler sergiler. T. chebula'nın etkinliğiAH tedavisindeki mevcut standart farmakolojik tedavi ile hayvan ve klinik testler ve araştırmalarda karşılaştırılmalıdır. Bu tür çalışmalar, klinik araştırmaların geçerliliğini iyileştirmek için aktif ilkenin/ilkelerin tanımlanmasını içermelidir. O zamana kadar bu derleme, Alzheimer hastalığının tedavisinde T. chebula'nın faydaları hakkında bazı kanıtlar sunmaktadır.

        şekil 2
        Anti-Alzheimer tedavisi ile ilgili T. chebula'nın antikolinesteraz, anti-inflamatuar ve antioksidan özellikleri .

        Git: Çıkar Çatışması


        Yazarlar herhangi bir çıkar çatışması olmadığını onaylarlar.

        Git: Referanslar

        1. Stern Y. Bilişsel rezerv ve Alzheimer hastalığı. Alzheimer Hastalığı ve İlişkili Bozukluklar . 2006; 20 (2):112–117. doi: 10.1097/01.wad.0000213815.20177.19. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Adhami H.-R., Farsam H., Krenn L. Asetilkolinesteraz inhibisyonu için İran geleneksel tıbbından tıbbi bitkilerin taranması. Fitoterapi Araştırması . 2011; 25 (8),:1148–1152. doi: 10.1002/ptr.3409. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        3. Vinutha B., Prashanth D., Salma K., et al. Asetilkolinesteraz inhibitör aktivitesi için seçilmiş Hint şifalı bitkilerinin taranması. Etnofarmakoloji Dergisi . 2007; 109 (2):359-363. doi: 10.1016/j.jep.2006.06.014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Chopra K., Misra S., Kuhad A. Alzheimer hastalığının farmakoterapisine güncel bakış açıları. Farmakoterapiye İlişkin Uzman Görüşü . 2011; 12 (3):335–350. doi: 10.1517/14656566.2011.520702. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        5. López S., Bastida J., Viladomat F., Codina C. Bazı Amaryllidaceae alkaloitlerinin ve Narcissus özlerinin asetilkolinesteraz inhibitör aktivitesi. Yaşam Bilimleri . 2002; 71 (21):2521–2529. doi: 10.1016/s0024-3205(02)02034-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        6. Ellman GL, Courtney KD, Andres V., Jr., Featherstone RM Asetilkolinesteraz aktivitesinin yeni ve hızlı bir kolorimetrik tayini. Biyokimyasal Farmakoloji . 1961; 7 (2):88–95. doi: 10.1016/0006-2952(61)90145-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        7. Rhee IK, van de Meent M., Ingkaninan K., Verpoorte R. Amaryllidaceae kaynaklı asetilkolinesteraz inhibitörleri için silika jel ince tabaka kromatografisi ile biyoaktivite boyama ile birlikte tarama. Kromatografi Dergisi A. 2001; 915 (1-2):217–223. doi: 10.1016/s0021-9673(01)00624-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        8. Anand P., Singh B. Alzheimer hastalığı için kolinesteraz inhibitörleri üzerine bir inceleme. Farmasötik Araştırma Arşivleri . 2013; 36 (4):375–399. doi: 10.1007/s12272-013-0036-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Dirin MM, Mousavi S., Afshari AR, Tabrizian K., Ashrafi MH Doğu İran'da toplum ve hastane eczanelerinde verilen reçetelerdeki potansiyel ilaç-ilaç etkileşimleri. Eczacılık Uygulamasında Araştırma Dergisi . 2014; 3 (3):104–107. doi: 10.4103/2279-042x.141118. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        10. May BH, Lit M., Xue CCL, et al. Demans için bitkisel ilaç: sistematik bir derleme. Fitoterapi Araştırması . 2009; 23 (4):447–459. doi: 10.1002/ptr.2656. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        11. Akhondzadeh S., Abbasi SH Alzhelmer hastalığının tedavisinde bitkisel ilaç. Amerikan Alzheimer Hastalığı ve Diğer Demanslar Dergisi . 2006; 21 (2):113–118. doi: 10.1177/153331750602100211. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        12. Santos-Neto LLD, de Vilhena Toledo MA, Medeiros-Souza P., de Souza GA Alzheimer hastalığında bitkisel ilaçların kullanımı—sistematik bir derleme. Kanıta Dayalı Tamamlayıcı ve Alternatif Tıp . 2006; 3 (4):441–445. doi: 10.1093/ecam/nel071. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        13. Saleem A., Husheem M., Härkönen P., Pihlaja K. Ham ekstre ve Terminalia chebula retz fenolikleri ile kanser hücresi büyümesinin inhibisyonu. meyve. Etnofarmakoloji Dergisi . 2002; 81 (3):327–336. doi: 10.1016/s0378-8741(02)00099-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        14. Ali SK, Hamed AR, Soltan MM, et al. Alzheimer hastalığının tedavisi için seçilmiş Mısır geleneksel bitkisel ilaçlarının in vitro değerlendirmesi. BMC Tamamlayıcı ve Alternatif Tıp . 2013; 13 (1):s. 121. doi: 10.1186/1472-6882-13-121. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        15. Rathinamoorthy R., Thilagavathi G. Terminalia chebula —farmakolojik ve biyokimyasal çalışmalar üzerine inceleme. Uluslararası PharmTech Araştırma Dergisi . 2014; 6 (1):97–116. [ Google Akademik ]
        16. Manosroi A., Jantrawut P., Ogihara E., et al. Terminalia chebula Galls'tan fenolik bileşiklerin ve triterpenoidlerin biyolojik aktiviteleri . Kimya ve Biyoçeşitlilik . 2013; 10 (8):1448–1463. doi: 10.1002/cbdv.201300149. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        17. Rao NK, Nammi S. Terminalia chebula Retz'in kloroform ekstraktının antidiyabetik ve renoprotektif etkileri. streptozotosin ile indüklenen diyabetik sıçanlarda tohumlar. BMC Tamamlayıcı ve Alternatif Tıp . 2006; 6 (1, madde 17) doi: 10.1186/1472-6882-6-17. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        18. Aneja K., Joshi R. Terminalia chebula meyve özlerinin diş çürüğü patojenlerine karşı antimikrobiyal özelliklerinin değerlendirilmesi . Jundishapur Mikrobiyoloji Dergisi . 2009; 2 (3):105–111. [ Google Akademik ]
        19. Dutta B., Rahman I., Das T. Hint bitki özlerinin antifungal aktivitesi: antimyzetische Aktivität indischer Pflanzenextrakte. mikozlar . 1998; 41 (11-12):535-536. doi: 10.1111/j.1439-0507.1998.tb00718.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. Aher V., Wahi A. Terminalia chebula retz combretaceae alkol ekstraktının immünomodülatör aktivitesi. Tropikal Eczacılık Araştırmaları Dergisi . 2011; 10 (5):567–575. [ Google Akademik ]
        21. Ahn M.-J., Kim CY, Lee JS, et al. HIV-1 entegrasyonunun, Terminalia chebula'dan galloil glikozlar ve Euphorbia pekinensis'ten flavonol glikozit gallatlar tarafından inhibisyonu . Planta Medica'nın fotoğrafı . 2002; 68 (5):457–459. doi: 10.1055/s-2002-32070. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        22. Maruthappan V., Shree KS Haritaki'nin ( Terminalia chebula ) aterojenik diyet ile indüklenen hiperlipidemik sıçanlarda hipolipidemik aktivitesi. İleri Farmasötik Teknoloji ve Araştırma Dergisi . 2010; 1 (2):229–235. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        23. Srigopalram S., Jayraaj IA Deney farelerinde Terminalia chebula retz'in den kaynaklı hepatoselüler karsinogenez üzerindeki etkisi. Uluslararası Eczacılık ve Eczacılık Bilimleri Dergisi . 2012; 4 (2):440–445. [ Google Akademik ]
        24. Sharma P., Prakash T., Kotresha D., et al. Sıçanlarda deneysel olarak indüklenen ülserde Terminalia chebula meyvesinin antiülserojenik aktivitesi . Farmasötik Biyoloji . 2011; 49 (3):262–268. doi: 10.3109/13880209.2010.503709. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        25. Singh MP, Sharma CS Deneysel olarak indüklenen diyabetik sıçanlarda Terminalia chebula'nın yara iyileştirme aktivitesi . Uluslararası PharmTech Araştırma Dergisi . 2009; 1 (4):1267-1270. [ Google Akademik ]
        26. Engels C., Knödler M., Zhao Y.-Y., Carle R., Gänzle MG, Schieber A. Mango ( Mangifera indica L.) çekirdeklerinden izole edilen gallotanninlerin antimikrobiyal aktivitesi . Tarım ve Gıda Kimyası Dergisi . 2009; 57 (17):7712-7718. doi: 10.1021/jf901621m. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        27. Zhao X., Sun H., Hou A., Zhao Q., Wei T., Xin W. Pistacia weinmannifolia'nın yapraklarından izole edilen iki gallotanninin antioksidan özellikleri . Biochimica et Biophysica Açta (BBA)—Genel Konular . 2005; 1725 (1):103–110. doi: 10.1016/j.bbagen.2005.04.015. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        28. Sangiovanni E., Vrhovsek U., Rossoni G., et al. Gastrik inflamasyonun kontrolü için Rubus meyvelerinden elde edilen ellagitanninler: in vitro ve in vivo çalışmalar. PLoS BİR . 2013; 8 (8) doi: 10.1371/journal.pone.0071762. e71762 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        29. Hussein RH, Khalifa FK Ellagitanninlerin flavonoidlerin N -nitrosodietilamin kaynaklı hepatoselüler karsinomaya karşı koruyucu rolü. Suudi Biyolojik Bilimler Dergisi . 2014; 21 (6):589–596. doi: 10.1016/j.sjbs.2014.03.004. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        30. Lee W., Lee SY, Son Y., Yun J. Gallik asit, yüksek glikozun neden olduğu insan monositlerinde histon asetiltransferaz/histon deasetilaz düzenlemesi yoluyla inflamatuar sitokin salgılanmasını azaltır. Tıbbi Gıda Dergisi . 2015; 18 (7):793-801. doi: 10.1089/jmf.2014.3342. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        31. Walia H., Arora S. Terminalia chebula —farmakogistik bir açıklama. Tıbbi Bitkiler Araştırma Dergisi . 2013; 7 (20):1351-1361. [ Google Akademik ]
        32. Priscilla DH, Prince PSM Wistar sıçanlarında deneysel olarak indüklenen miyokard enfarktüsünde gallik asidin kardiyak troponin-T, kardiyak marker enzimleri, lipid peroksidasyon ürünleri ve antioksidanlar üzerindeki kardiyoprotektif etkisi. Kimyasal-Biyolojik Etkileşimler . 2009; 179 (2-3):118–124. doi: 10.1016/j.cbi.2008.12.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        33. Reynolds LD, Wilson NG Katipleri ve Bilginleri . Cambridge, Birleşik Krallık: Cambridge University Press; 1974. [ Google Akademik ]
        34. Ho H.-H., Chang C.-S., Ho W.-C., Liao S.-Y., Wu C.-H., Wang C.-J. Galik asidin mide kanseri hücreleri üzerindeki anti-metastaz etkileri, NF-kB aktivitesinin inhibisyonunu ve PI3K/AKT/küçük GTPaz sinyallerinin aşağı regülasyonunu içerir. Gıda ve Kimyasal Toksikoloji . 2010; 48 (8-9):2508–2516. doi: 10.1016/j.fct.2010.06.024. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        35. Farag MA, Al-Mahdy DA, Salah El Dine R., et al. Nar ve akasya meyve ekstraktlarından elde edilen antimikrobiyal gallik asit türevlerinin patates bakteriyel solgunluk patojenine karşı yapı-aktivite ilişkileri. Kimya ve Biyoçeşitlilik . 2015; 12 (6):955–962. doi: 10.1002/cbdv.201400194. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        36. İbrahim A., El Kareem R., Sheir M. Akrilamid genotoksisitesinin ve nörotoksisitesinin aydınlatılması ve gallik asit ve yeşil çayın koruyucu rolü. Adli Toksikoloji ve Farmakoloji Dergisi . 2015; 4 (1, makale 1) doi: 10.4172/2325-9841.1000135. [ CrossRef ] [ Google Akademik ]
        37. Hamada S.-I., Kataoka T., Woo J.-T., et al. Gallik asit ve şebulajik asidin CTL aracılı sitotoksisite üzerindeki immünosupresif etkileri. Biyolojik ve Farmasötik Bülten . 1997; 20 (9):1017–1019. doi: 10.1248/bpb.20.1017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        38. Sarkaki A., Fathimoghaddam H., Mansouri SMT, Korrani MS, Saki G., Farbood Y. Gallik asit, sıçanlarda kronik serebral hipoperfüzyonun neden olduğu bilişsel, hipokampal uzun vadeli güçlenme eksikliklerini ve beyin hasarını iyileştirir. Pakistan Biyolojik Bilimler Dergisi . 2014; 17 (8):978-990. doi: 10.3923/pjbs.2014.978.990. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        39. Ajala OS, Jukov A., Ma C.-M. Terminalia chebula meyvelerinden hepatit C virüsü inhibitör hidrolize olabilen tanenler . Fitoterapi . 2014; 99 :117-123. doi: 10.1016/j.fitote.2014.09.014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        40. Pham AT, Malterud KE, Paulsen BS, Diallo D., Wangensteen H. a -Glukosidaz inhibisyonu, 15-lipoksijenaz inhibisyonu ve Terminalia macroptera yapraklarından elde edilen ekstraktların ve izole edilmiş bileşiklerin tuzlu su karidesi toksisitesi . Farmasötik Biyoloji . 2014; 52 (9):1166–1169. doi: 10.3109/13880209.2014.880486. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        41. Lee H.-S., Jung S.-H., Yun B.-S., Lee K.-W. Terminalia chebula Retz'den chebulik asit izolasyonu . ve izole sıçan hepatositlerinde antioksidan etkisi. Toksikoloji Arşivleri . 2007; 81 (3):211–218. doi: 10.1007/s00204-006-0139-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        42. Yang Y., Xiu J., Liu J., et al. Hidrolize edilebilir bir tanen olan Chebulagic asit, insan enterovirüsüne karşı in vitro ve in vivo antiviral aktivite sergiledi 71. International Journal of Molecular Sciences . 2013; 14 (5):9618–9627. doi: 10.3390/ijms14059618. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        43. Banerjee R., Mukherjee G., Patra KC Tanen açısından zengin substratın ortak kültür yöntemiyle gallik aside mikrobiyal dönüşümü. Biyokaynak Teknolojisi . 2005; 96 (8):949–953. doi: 10.1016/j.biortech.2004.08.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        44. Reddy DB, Reddanna P. Chebulagic asit (CA), RAW 264.7 makrofajlarında NF- κ B ve MAPK aktivasyonunu baskılayarak LPS kaynaklı inflamasyonu hafifletir . Biyokimyasal ve Biyofiziksel Araştırma İletişimi . 2009; 381 (1):112–117. doi: 10.1016/j.bbrc.2009.02.022. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        45. Huang Y.-N., Zhao D.-D., Gao B., et al. Terminalia chebula Retz'in meyvelerinden chebulagic asitin anti-hiperglisemik etkisi . Uluslararası Moleküler Bilimler Dergisi . 2012; 13 (5):6320–6333. doi: 10.3390/ijms13056320. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        46. Kim HJ, Kim J., Kang KS, Lee KT, Yang HO SH-SY5Y hücrelerinde otofaji indüksiyonu yoluyla chebulagic asitin nöroprotektif etkisi. Biyomoleküller ve Terapötikler . 2014; 22 (4):275-281. doi: 10.4062/biomolther.2014.068. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        47. Athira AP, Helen A., Saja K., Reddanna P., Sudhakaran PR Anjiyogenezin chebulagic asit tarafından in vitro inhibisyonu: bir COX-LOX ikili inhibitörü. Uluslararası Vasküler Tıp Dergisi . 2013; 2013 : 8. doi: 10.1155/2013/843897. 843897 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        48. Kumar N., Gangappa D., Gupta G., Karnati R. Terminalia chebula kaynaklı chebulagic asit G1 tutuklanmasına neden olur, NF κ B'yi inhibe eder ve retinoblastom hücrelerinde apoptozu indükler. BMC Tamamlayıcı ve Alternatif Tıp . 2014; 14, madde 319 doi: 10.1186/1472-6882-14-319. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        49. Mishra V., Agrawal M., Onasanwo SA, et al. Terminalia chebula'nın meyvelerinden izole edilen chebulinik asidin mide ülserleri üzerindeki salgı önleyici ve sito-koruyucu etkileri . bitki tıbbı . 2013; 20 (6):506–511. doi: 10.1016/j.phymed.2013.01.002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        50. Lu K., Chakroborty D., Sarkar C., et al. Triphala ve aktif bileşeni kebulinik asit, vasküler endotelyal büyüme faktörü-a aracılı anjiyogenezin doğal inhibitörleridir. PLoS BİR . 2012; 7 (8) doi: 10.1371/journal.pone.0043934. e43934 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        51. Yi Z.-C., Wang Z., Li H.-X., Liu M.-J., Wu R.-C., Wang X.-H. Chebulinik asidin insan lösemi K562 hücrelerinin farklılaşması üzerindeki etkileri. Acta Pharmacologica Sinica . 2004; 25 (2):231–238. [ PubMed ] [ Google Akademik ]
        52. Tanaka T., Kouno I., Nonaka G.-I. Ellagitannin geraniinin glutatyon aracılı dönüşümü chebulagic aside. Kimya ve İlaç Bülteni . 1996; 44 (1):34–40. doi: 10.1248/cpb.44.34. [ CrossRef ] [ Google Akademik ]
        53. Mansouri M., Hemmati A., Naghizadeh B., Mard S., Rezaie A., Ghorbanzadeh B. Sıçanlarda karagenan kaynaklı pençe ödeminde ellagik asidin anti-inflamatuar etkisinin altında yatan mekanizmaların incelenmesi. Hint Farmakoloji Dergisi . 2015; 47 (3):292–298. doi: 10.4103/0253-7613.157127. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        54. Goswami S., Vishwanath M., Gangadarappa S., Razdan R., Inamdar M. Diyabetin neden olduğu cinsel işlev bozukluğunda ellagik asit ve sildenafilin etkinliği. Farmakognozi Dergisi . 2014; 10 (ek 3):581–587. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        55. García-Niño WR, Zazueta C. Ellagik asit: karaciğer korumasında rol oynayan farmakolojik aktiviteler ve moleküler mekanizmalar. Farmakolojik Araştırma . 2015; 97 :84–103. doi: 10.1016/j.phrs.2015.04.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        56. Dianat M., Amini N., Badavi M., Farbood Y. Ellagik asit, sıçan stres modelinde CaCL2 tarafından indüklenen aritmileri iyileştirdi. Avicenna Bitkisel Tıp Dergisi . 2015; 5 (2):120–127. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        57. Dolatshahi M., Farbood Y., Sarkaki A., Mansouri SMT, Khodadadi A. Ellagik asit, Parkinson hastalığının 6-hidroksidopamin ile indüklenen sıçan modelinde hiperaljezi ve bilişsel eksikliği iyileştirir. İran Temel Tıp Bilimleri Dergisi . 2015; 18 (1):38–46. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        58. Farbood Y., Sarkaki A., Dianat M., Khodadadi A., Haddad MK, Mashhadizadeh S. Ellagik asit, travmatik beyin hasarı olan sıçanlarda bilişsel ve hipokampal uzun vadeli güçlenme eksikliklerini ve beyin iltihabını önler. Yaşam Bilimleri . 2015; 124 :120–127. doi: 10.1016/j.lfs.2015.01.013. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        59. Wang C., Zhang D., Ma H., Liu J. Emodin-8-O- p -d-glukozitin in vivo ve in vitro nöroprotektif etkileri. Avrupa Farmakoloji Dergisi . 2007; 577 (1–3):58–63. doi: 10.1016/j.ejphar.2007.08.033. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        60. Xu Y.-L., Tang L.-Y., Zhou X.-D., Zhou G.-H., Wang Z.-J. Cassia obtusifolia tohumundan beş yeni antrakinon . Farmasötik Araştırma Arşivleri . 2015; 38 (6):1054-1058. doi: 10.1007/s12272-014-0462-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        61. Gupta PC Terminalia chebula retz'in biyolojik ve farmakolojik özellikleri . (haritaki)- genel bakış. Uluslararası Eczacılık ve Eczacılık Bilimleri Dergisi . 2012; 4 (ek 3):62–68. [ Google Akademik ]
        62. Çanta A., Bhattacharyya SK, Chattopadhyay RR Terminalia chebula Retz'in gelişimi . (Combretaceae) klinik araştırmalarda. Asya Pasifik Tropikal Biyotıp Dergisi . 2013; 3 (3):244–252. doi: 10.1016/s2221-1691(13)60059-3. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        63. Mueller-Harvey I. Hidrolize edilebilir tanenlerin analizi. Hayvan Yemi Bilimi ve Teknolojisi . 2001; 91 (1-2):3–20. doi: 10.1016/s0377-8401(01)00227-9. [ CrossRef ] [ Google Akademik ]
        64. Lokeswari N., Raju KJ Aspergillus niger tarafından terminalia chebula'dan gallik asit üretiminin optimizasyonu . E-Kimya Dergisi . 2007; 4 (2):287–293. doi: 10.1155/2007/649306. [ CrossRef ] [ Google Akademik ]
        65. Niemetz R., Gallotannin ve ellagitannin biyosentezinin Brüt GG Enzimolojisi. Fitokimya . 2005; 66 (17): 2001–2011. doi: 10.1016/j.phytochem.2005.01.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        66. Yoshida T., Amakura Y., Yoshimura M. Myrtales takımının bazı bitki ailelerinde ellagitanninlerin yapısal özellikleri ve biyolojik özellikleri. Uluslararası Moleküler Bilimler Dergisi . 2010; 11 (1):79–106. doi: 10.3390/ijms11010079. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        67. Chen P.-S., Li J.-H. Terminalia catappa'dan izole edilen yeni bir tanen bileşeni olan punicalagin'in H-ras ile dönüştürülmüş NIH3T3 hücreleri üzerindeki kemopreventif etkisi. Toksikoloji Mektupları . 2006; 163 (1):44–53. doi: 10.1016/j.toxlet.2005.09.026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        68. Han Q., Song J., Qiao C., Wong L., Xu H. Terminalia chebula'dan hidrolize edilebilir tanenler şebulajik asit ve şebulinik asidin yüksek hızlı karşı akım kromatografisi ile preparatif izolasyonu. Ayırma Bilimi Dergisi . 2006; 29 (11):1653-1657. doi: 10.1002/jssc.200600089. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        69. Sharma HK, Soni S., Kaushal P., Singh C. Harad kaynaklı biyoaktif bileşiklerin antioksidan aktiviteleri üzerinde proses parametrelerinin etkisi ( Terminalia chebula retz.) Shilpa Soni, HK Sharma, Pragati Kaushal ve C. Singh Food Engineering & Teknoloji Departmanı, Sant Longowal Mühendislik Enstitüsü. Ziraat Mühendisliği Uluslararası: CIGR Dergisi . 2015; 17 (2) [ Google Akademik ]
        70. Lopes GKB, Schulman HM, Hermes-Lima M. Polifenol tannik asit, demir iyonlarını kompleksleştirerek Fenton reaksiyonundan hidroksil radikal oluşumunu engeller. Biochimica et Biophysica Açta (BBA)—Genel Konular . 1999; 1472 (1-2):142–152. doi: 10.1016/s0304-4165(99)00117-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        71. Surveswaran S., Cai Y.-Z., Corke H., Sun M. 133 Hint şifalı bitkisinden elde edilen doğal fenolik antioksidanların sistematik değerlendirmesi. Gıda Kimyası . 2007; 102 (3):938-953. doi: 10.1016/j.foodchem.2006.06.033. [ CrossRef ] [ Google Akademik ]
        72. Onial P., Dayal R., Rawat M., Kumar R. Terminalia chebula Retz'in kullanımı . tekstil uygulamaları için doğal boya kaynağı olarak meyve perikarp. Hindistan Doğal Ürünler ve Kaynaklar Dergisi (IJNPR) 2015; 6 (2):114–121. [ Google Akademik ]
        73. Kim HG, Cho JH, Jeong EY, Lim JH, Lee SH, Lee HS Terminalia chebula meyvelerinden izole edilen aktif bileşenin bağırsak bakterilerine karşı büyümeyi önleyici aktivitesi . Gıda Koruma Dergisi . 2006; 69 (9):2205–2209. [ PubMed ] [ Google Akademik ]
        74. Onial P., Rawat M., Dayal R. Terminalia chebula tohumları çekirdeklerinin yağlı yağının kimyasal çalışmaları . Analitik Kimya Harfleri . 2014; 4 (5-6):359-363. doi: 10.1080/22297928.2014.990405. [ CrossRef ] [ Google Akademik ]
        75. Zhang X., Chen C., He S., Ge F. Terminalia chebula'daki yağlı yağın süperkritik-C02 sıvı ekstraksiyonu ve GC-MS analizi. Çin Tıbbi Malzemeler Dergisi . 1997; 20 (9):463–464. [ PubMed ] [ Google Akademik ]
        76. Reddy DB, Reddy TCM, Jyotsna G., et al. Terminalia chebula Retz. meyvelerinden izole edilen bir COX-LOX ikili inhibitörü olan Chebulagic asit, COLO -205 hücre hattında apoptozu indükler. Etnofarmakoloji Dergisi . 2009; 124 (3):506–512. doi: 10.1016/j.jep.2009.05.022. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        77. Anand P., Singh B., Singh N. Alzheimer hastalığı için asetilkolinesteraz inhibitörleri olarak kumarinler üzerine bir inceleme. Biyoorganik ve Tıbbi Kimya . 2012; 20 (3):1175-1180. doi: 10.1016/j.bmc.2011.12.042. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        78. Pohanka M. Alpha7 nikotinik asetilkolin reseptörü farmakoloji ve toksikolojide bir hedeftir. Uluslararası Moleküler Bilimler Dergisi . 2012; 13 (2):2219–2238. doi: 10.3390/ijms13022219. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        79. Suarez-Lopez JR, Himes JH, Jacobs DR, Jr., Alexander BH, Gunnar MR Asetilkolinesteraz aktivitesi ve kız ve erkek çocuklarda nörogelişim. Pediatri . 2013; 132 (6):e1649–e1658. doi: 10.1542/peds.2013-0108. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        80. Bartels CF, Zelinski T., Lockridge O. İnsan asetilkolinesteraz (ACHE) genindeki kodon 322'deki mutasyon, YT kan grubu polimorfizminden sorumludur. Amerikan İnsan Genetiği Dergisi . 1993; 52 (5):928-936. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        81. Greenfield S., Vaux DJ Parkinson hastalığı, Alzheimer hastalığı ve motor nöron hastalığı: ortak bir mekanizmanın belirlenmesi. Nörobilim . 2002; 113 (3):485-492. doi: 10.1016/s0306-4522(02)00194-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        82. Day T., Greenfield SA Asetilkolinesterazdan türetilen bir peptit, nöronal hücre ölümünü indükler: olası mekanizmaların karakterizasyonu. Deneysel Beyin Araştırması . 2003; 153 (3):334–342. doi: 10.1007/s00221-003-1567-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        83. Francis PT, Nordberg A., Arnold SE Nöroproteksiyonda kolinesteraz inhibitörlerine klinik öncesi bir bakış: Alzheimer hastalığında semptomatik faydalardan fazlasını mı sağlıyorlar? Farmakolojik Bilimlerde Eğilimler . 2005; 26 (2):104–111. doi: 10.1016/j.tips.2004.12.010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        84. Darreh-Shori T., Hellström-Lindahl E., Flores-Flores C., Guan ZZ, Soreq H., Nordberg A. Antikolinesteraz ile tedavi edilen Alzheimer hastalığı hastalarında uzun süreli asetilkolinesteraz ekleme varyasyonları. Nörokimya Dergisi . 2004; 88 (5):1102–1113. doi: 10.1046/j.1471-4159.2003.02230.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        85. Borisovskaya A., Pascualy M., Borson S. Alzheimer hastalığında bilişsel ve nöropsikiyatrik bozukluklar: mevcut tedavi stratejileri. Güncel Psikiyatri Raporları . 2014; 16 (9):1–9. doi: 10.1007/s11920-014-0470-z. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        86. Oh MH, Houghton PJ, Whang WK, Cho JH Antikolinesteraz aktivitesi için bilişsel işlevi geliştirmek için kullanılan Kore bitkisel ilaçlarının taranması. bitki tıbbı . 2004; 11 (6):544–548. doi: 10.1016/j.phymed.2004.03.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        87. Demanslı hastalarda Schulz V. Ginkgo özütü veya kolinesteraz inhibitörleri: hangi klinik deneyler ve kılavuzlar dikkate almıyor. bitki tıbbı . 2003; 10 (4):74–79. doi: 10.1078/1433-187x-00302. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        88. Sancheti S., Sancheti S., Um B.-H., Seo S.-Y. 1,2,3,4,6-penta- O - galloil- β -D-glukoz: Terminalia chebula kaynaklı bir kolinesteraz inhibitörü . Güney Afrika Botanik Dergisi . 2010; 76 (2):285–288. doi: 10.1016/j.sajb.2009.11.006. [ CrossRef ] [ Google Akademik ]
        89. Nag G., De B. Terminalia chebula , Terminalia bellerica ve Emblica officinalis ve bazı fenolik bileşiklerin asetilkolinesteraz inhibitör aktivitesi. Uluslararası Eczacılık ve Eczacılık Bilimleri Dergisi . 2011; 3 (3):121–124. [ Google Akademik ]
        90. Murray AP, Faraoni MB, Castro MJ, Alza NP, Cavallaro V. Bitkilerden elde edilen doğal AChE inhibitörleri ve bunların Alzheimer hastalığı tedavisine katkıları. Güncel Nörofarmakoloji . 2013; 11 (4):388–413. doi: 10.2174/1570159x11311040004. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        91. Süleyman C., Sadashiva C., George S., Balachandran I. Terminalia chebula'nın asetilkolinstraz inhibisyonu ve antioksidan aktivitesi , Retz. Tropikal Şifalı Bitkiler Dergisi . 2012; 13 (2):125–127. [ Google Akademik ]
        92. Upadhyay A., Singh DK Sapindus mukorossi ve Terminalia chebula'nın aktif yumuşakça öldürücü bileşenleri tarafından vektör salyangoz Lymnaea acuminata'nın sinir dokusundaki belirli enzimlerin inhibisyon kinetiği . Kemosfer . 2011; 85 (6):1095–1100. doi: 10.1016/j.chemosphere.2011.07.041. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        93. Parle M., Vasudevan M. Abana'nın hafıza arttırıcı aktivitesi: Hintli bir ayurvedik poli-bitkisel formülasyon. Sağlık Bilimleri Dergisi . 2007; 53 (1):43–52. doi: 10.1248/jhs.53.43. [ CrossRef ] [ Google Akademik ]
        94. Walia H., Kaur J., Arora S. Salmonella typhimurium'un TA-102 suşu kullanılarak sıralı yöntemle hazırlanan Terminalia chebula meyve özlerinin antioksidan etkinliği . Spatula DD . 2012; 2 (2):165-171. doi: 10.5455/spatula.20120917112347. [ CrossRef ] [ Google Akademik ]
        95. Dhivya P., Sobiya M., Selvamani P., Latha S. Çeşitli bitki türlerinden kolinesteraz önleyici aktivite ile Alzheimer hastalığı tedavisine bir yaklaşım. Uluslararası PharmTech Araştırma Dergisi . 2014; 6 (5):1450–1467. [ Google Akademik ]
        96. Pithayanukul P., Ruenraroengsak P., Bavovada R., Pakmanee N., Suttisri R. In vitro. Tannik asidin Naja kaouthia aktivitelerine karşı koruyucu etkilerinin araştırılması . Zehir. Farmasötik Biyoloji . 2007; 45 (2):94-97. doi: 10.1080/13880200601112885. [ CrossRef ] [ Google Akademik ]
        97. Mathew M., Subramanian S. Bilişsel bozukluklar için kullanılan ayurvedik şifalı bitkilerin metanolik ekstraktlarının antikolinesteraz ve antioksidan aktivitesi için in vitro tarama. PLoS BİR . 2014; 9 (1) doi: 10.1371/journal.pone.0086804. e86804 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        98. Shin TY, Jeong HJ, Kim DK, et al. Terminalia chebula'nın suda çözünür fraksiyonunun sistemik ve lokal anafilaksi üzerindeki inhibitör etkisi. Etnofarmakoloji Dergisi . 2001; 74 (2):133–140. doi: 10.1016/s0378-8741(00)00360-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        99. Choi K.-C., Lee Y.-H., Jung MG, et al. Gallik asit , A549 akciğer kanseri hücrelerinde RelA asetilasyonunu önleyerek lipopolisakkarit kaynaklı nükleer faktör- κ B sinyalini baskılar. Moleküler Kanser Araştırması . 2009; 7 (12):2011–2021. doi: 10.1158/1541-7786.mcr-09-0239. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        100. Das ND, Jung KH, Park JH, et al. Terminalia chebula özü , insan lenfoblastik T hücrelerinde potansiyel bir NF- κ B inhibitörü olarak görev yapar. Fitoterapi Araştırması . 2011; 25 (6):927-934. doi: 10.1002/ptr.3398. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        101. Kim M.-J., Seong A.-R., Yoo J.-Y., et al. Bir histon asetiltransferaz inhibitörü olan gallik asit, mikroglial aracılı nöroinflamasyonu inhibe ederek β -amiloid nörotoksisitesini bastırır. Moleküler Beslenme ve Gıda Araştırmaları . 2011; 55 (12):1798–1808. doi: 10.1002/mnfr.201100262. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        102. Wang Y.-J., Thomas P., Zhong J.-H., et al. Üzüm çekirdeği ekstresi tüketimi, amiloid- β birikimini önler ve alzheimer hastalığı olan bir farenin beynindeki iltihabı hafifletir. Nörotoksisite Araştırması . 2009; 15 (1):3–14. doi: 10.1007/s12640-009-9000-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        103. Kim S.-H., Jun C.-D., Suk K., et al. Gallik asit, mast hücrelerinde histamin salınımını ve proinflamatuar sitokin üretimini engeller. Toksikolojik Bilimler . 2006; 91 (1):123–131. doi: 10.1093/toxsci/kfj063. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        104. Nair V., Singh S., Gupta YK Terminalia chebula Retz'in anti-artritik ve hastalık değiştirici aktivitesi . deneysel modellerde. Eczacılık ve Farmakoloji Dergisi . 2010; 62 (12): 1801–1806. doi: 10.1111/j.2042-7158.2010.01193.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        105. Moeslinger T., Friedl R., Volf I., Brunner M., Koller E., Spieckermann PG Makrofaj hücre hattında bitkisel preparat Padma 28 ile indüklenebilir nitrik oksit sentezinin inhibisyonu. Kanada Fizyoloji ve Farmakoloji Dergisi . 2000; 78 (11):861-866. doi: 10.1139/y00-068. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        106. Patil R., Nanjwade B., Manvi F. Sesbania grandiflora kabuğunun ve Terminalia chebula meyvesinin sıçanlarda anti-inflamatuar ve antiartritik etkisinin değerlendirilmesi. Uluslararası Farmakoloji ve Biyoloji Bilimleri Dergisi . 2011; 5 (1):37–46. [ Google Akademik ]
        107. Torba A., Kumar Bhattacharyya S., Kumar Pal N., Chattopadhyay RR Terminalia chebula meyvelerinin hidroalkolik ekstraktının anti-inflamatuar, anti-lipid peroksidatif, antioksidan ve membran stabilize edici aktiviteleri . Farmasötik Biyoloji . 2013; 51 (12):1515–1520. doi: 10.3109/13880209.2013.799709. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        108. Sabina EP, Rasool M. Hint ayurvedik bitkisel formülasyonu Triphala'nın farelerde deneysel gut artriti üzerindeki in vivo ve in vitro potansiyeli. Vasküler Farmakoloji . 2008; 48 (1):14–20. doi: 10.1016/j.vph.2007.11.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        109. Ramani YR, Pradhan S. Terminalia chebula'nın aseton ekstraktının antiartritik aktivitesi . WebmedCentral Farmakoloji . 2012; 3 (2):1–9. doi: 10.9754/journal.wmc.2012.003057. WMC003057 [ Çapraz Referans ] [ Google Akademik ]
        110. Srivastava P., Raut HN, Wagh RS, Puntambekar HM, Kulkarni MJ Terminalia chebula meyvesinden bir antioksidan proteinin (~16 kDa) saflaştırılması ve karakterizasyonu . Gıda Kimyası . 2012; 131 (1):141–148. doi: 10.1016/j.foodchem.2011.08.048. [ CrossRef ] [ Google Akademik ]
        111. Atwood CS, Obrenovich ME, Liu T., et al. Amiloid- β : iki dünyada yürüyen bir bukalemun: amiloid- β'nın trofik ve toksik özelliklerinin gözden geçirilmesi . Beyin Araştırma İncelemeleri . 2003; 43 (1):1–16. doi: 10.1016/s0165-0173(03)00174-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        112. Uttara B., Singh AV, Zamboni P., Mahajan RT Oksidatif stres ve nörodejeneratif hastalıklar: yukarı ve aşağı yönde antioksidan terapötik seçeneklerin gözden geçirilmesi. Güncel Nörofarmakoloji . 2009; 7 (1):65–74. doi: 10.2174/157015909787602823. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        113. Hensley K., Hall N., Subramaniam R., et al. Alzheimer hastalığı histopatolojisi ile protein oksidasyonunun biyobelirteçleri arasındaki beyin bölgesel yazışmaları. Nörokimya Dergisi . 1995; 65 (5):2146–2156. [ PubMed ] [ Google Akademik ]
        114. Hensley K., Carney J., Hall N., Shaw W., Butterfield DA Neokortikal sinaptozomal membran protein altyapısında serbest radikal kaynaklı değişikliklerin Elektron paramanyetik rezonans araştırmaları. Serbest Radikal Biyoloji ve Tıp . 1994; 17 (4):321–331. doi: 10.1016/0891-5849(94)90018-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        115. Santos RX, Correia SC, Zhu X., et al. Yaşlanma ve Alzheimer hastalığında mitokondriyal DNA oksidatif hasarı ve onarımı. Antioksidanlar ve Redoks Sinyali . 2013; 18 (18):2444–2457. doi: 10.1089/ars.2012.5039. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        116. Mecocci P., MacGarvey U., Beal MF Alzheimer hastalığında mitokondriyal DNA'daki oksidatif hasar artar. Nöroloji Annals . 1994; 36 (5):747–751. doi: 10.1002/ana.410360510. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        117. Lee H.-T., Lin C.-S., Lee C.-S., Tsai C.-Y., Wei Y.-H. Sistemik lupus eritematozuslu hastalarda plazmada artan 8-hidroksi-2′-deoksiguanozin ve insan 8-oksoguanin DNA glikozilaz 1, antioksidan enzimler, mitokondriyal biyogenez ile ilgili proteinler ve lökositlerdeki glikolitik enzimlerin mRNA ekspresyonu. Klinik ve Deneysel İmmünoloji . 2014; 176 (1):66-77. doi: 10.1111/cei.12256. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        118. Lovell MA, Ehmann WD, Butler SM, Markesbery WR Alzheimer hastalığında beyinde yüksek tiyobarbitürik asit reaktif maddeler ve antioksidan enzim aktivitesi. Nöroloji . 1995; 45 (8):1594-1601. doi: 10.1212/WNL.45.8.1594. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        119. Subbarao KV, Richardson JS, Ang LC Alzheimer korteksinin otopsi örnekleri in vitro olarak artan peroksidasyon göstermektedir. Nörokimya Dergisi . 1990; 55 (1):342–345. doi: 10.1111/j.1471-4159.1990.tb08858.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        120. Down sendromunda Lott IT Antioksidanları. Biochimica et Biophysica Açta (BBA)—Hastalığın Moleküler Temeli . 2012; 1822 (5):657-663. doi: 10.1016/j.bbadis.2011.12.010. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        121. Whiley L., Sen A., Heaton J., et al. Alzheimer hastalığında değişmiş fosfatidilkolin metabolizmasının kanıtı. Yaşlanmanın Nörobiyolojisi . 2014; 35 (2):271–278. doi: 10.1016/j.neurobiolaging.2013.08.001. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        122. Mark RJ, Lovell MA, Markesbery WR, Uchida K., Mattson MP Lipid peroksidasyonunun bir aldehidik ürünü olan 4-hidroksinonenal için, iyon homeostazının bozulmasında ve amiloid β -peptid tarafından uyarılan nöronal ölümde bir rol. Nörokimya Dergisi . 1997; 68 (1):255–264. [ PubMed ] [ Google Akademik ]
        123. Klugman A., Naughton DP, Isaac M., Shah I., Petroczi A., Tabet N. Alzheimer hastalığında antioksidan enzimatik aktiviteler: asetilkolinesteraz inhibitörleri ile ilişki. Alzheimer Hastalığı Dergisi . 2012; 30 (3):467-474. doi: 10.3233/jad-2012-120124. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        124. Balazs L., Leon M. Alzheimer beyninde oksidatif bir zorluğun kanıtı. Nörokimyasal Araştırma . 1994; 19 (9):1131–1137. doi: 10.1007/bf00965146. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        125. Omar RA, Chyan Y.-J., Andorn AC, Poeggeler B., Robakis NK, Pappolla MA Alzheimer hastalığında antioksidan enzimlerin ekspresyonu arttı, ancak aktivitesi azaldı. Alzheimer Hastalığı Dergisi . 1999; 1 (3):139–145. [ PubMed ] [ Google Akademik ]
        126. Sasaki N., Toki S., Chowei H., et al. Alzheimer hastalığında nöronlarda ve astrositlerde ileri glikasyon son ürünleri için reseptörün immünohistokimyasal dağılımı. Beyin Araştırması . 2001; 888 (2):256-262. doi: 10.1016/s0006-8993(00)03075-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        127. Verma N., Vinayak M. Terminalia arjuna'nın kanserde antioksidan savunma sistemi üzerindeki etkisi. Moleküler Biyoloji Raporları . 2009; 36 (1):159-164. doi: 10.1007/s11033-008-9279-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        128. Khan A., Nazar H., Sabir SM, et al. Fare beyninde yaygın olarak kullanılan bazı tıbbi bitkilerin lipid peroksidasyonuna karşı antioksidan aktivitesi ve inhibitör etkisi. Afrika Geleneksel, Tamamlayıcı ve Alternatif Tıp Dergisi . 2014; 11 (5):83–90. doi: 10.4314/ajtcam.v11i5.14. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        129. Gautam MK, Goel S., Ghatule RR, Singh A., Nath G., Goel RK Terminalia chebula ekstraktının asetik asit kaynaklı deneysel kolit üzerindeki iyileştirici etkisi: antioksidanların rolü, serbest radikaller ve akut inflamatuar belirteç. inflamatuar farmakoloji . 2013; 21 (5):377-383. doi: 10.1007/s10787-012-0147-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        130. Chang CL, Lin CS Terminalia chebula Retzius özlerinin fitokimyasal bileşimi, antioksidan aktivitesi ve nöroprotektif etkisi . Kanıta Dayalı Tamamlayıcı ve Alternatif Tıp . 2012; 2012 :7. doi: 10.1155/2012/125247. 125247 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        131. Park JH, Joo HS, Yoo K.-Y., et al. Terminalia chebula tohumlarından elde edilen ekstrakt, SOD'leri ve BDNF seviyelerini koruyarak deneysel iskemik nöronal hasara karşı koruma sağlar. Nörokimyasal Araştırma . 2011; 36 (11):2043-2050. doi: 10.1007/s11064-011-0528-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        132. Na M., Bae K., Sik Kang S., et al. Terminalia chebula meyvesinin oksidatif stres üzerindeki sitoprotektif etkisi ve hücresel yaşlanma üzerindeki inhibitör etkisi . Fitoterapi Araştırması . 2004; 18 (9):737-741. doi: 10.1002/ptr.1529. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        133. Mahesh R., Bhuvana S., Begum VMH Terminalia chebula sulu ekstraktının genç ve yaşlı sıçanların karaciğer ve böbreklerindeki oksidatif stres ve antioksidan durumu üzerindeki etkisi. Hücre Biyokimyası ve İşlevi . 2009; 27 (6):358-363. doi: 10.1002/cbf.1581. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        134. Cheng H.-Y., Lin T.-C., Yu K.-H., Yang C.-M., Lin C.-C. Terminalia chebula'nın antioksidan ve serbest radikal süpürücü aktiviteleri . Biyolojik ve Farmasötik Bülten . 2003; 26 (9):1331-1335. doi: 10.1248/bpb.26.1331. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        135. Sarkar R., Mandal N. Hint şifalı bitkilerinin hidroalkolik özleri, antioksidan özellikleri aracılığıyla oksidatif stresin iyileşmesine yardımcı olabilir. Tamamlayıcı ve Bütünleştirici Tıp Dergisi . 2012; 9 (1):1–9. [ PubMed ] [ Google Akademik ]
        136. Manosroi A., Jantrawut P., Akihisa T., Manosroi W., Manosroi J. Terminalia chebula safra özütünün in vitro yaşlanma karşıtı aktiviteleri . Farmasötik Biyoloji . 2010; 48 (4):469-481. doi: 10.3109/13880200903586286. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        137. Lee KW, Kim YJ, Kim D.-O., Lee HJ, Lee CY Elmadaki başlıca fenolikler ve bunların toplam antioksidan kapasiteye katkıları. Tarım ve Gıda Kimyası Dergisi . 2003; 51 (22):6516–6520. doi: 10.1021/jf034475w. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        138. Mondal SC, Singh P., Kumar B., Singh SK, Gupta SK, Verma A. Yaşlanma ve potansiyel yaşlanma karşıtı fitokimyasallar: genel bir bakış. Dünya Eczacılık ve Farmasötik Bilimler Dergisi . 2014; 4 (1):426–454. [ Google Akademik ]

        Yorum yap


        • #5
          Anti-İnsan İmmün Yetmezlik Virüsü (HIV) -1 Aktivitesi İçin Geliştirilmiş Bitkisel Jel Formülasyonu İn Vitro HSV-2 Enfeksiyonunu da Engelliyor

          tarafından Nripendra Nath Mishra, Ajay Kesharwani, Aakanksha Agarwal, Suja Kizhiyedath Polachira, Reshmi Nair, ve Satish Kumar Gupta Üreme Hücresi Biyolojisi Laboratuvarı, Ulusal İmmünoloji Enstitüsü, Aruna Asaf Ali Marg, Yeni Delhi 110 067, Hindistan, Kurumsal Ar-Ge Merkezi, HLL Lifecare Limited, Akkulum, Thiruvananthapuram, Kerala 695017, Hindistan Yazışmaların ele alınması gereken yazar. Güncel Adres: Terapötik Monoklonal Antikor Laboratuvarı, Ulusal Biyoloji Enstitüsü, Sektör-62, NOIDA, Hindistan. Şimdiki Adresi: Anatomi ve Hücre Biyolojisi, Tıp Fakültesi, Saarland Üniversitesi, Homburg, Saar, Almanya.

          Geçerli Adres: Moleküler Bilimler ve Mühendislik Laboratuvarı, Amity ClickChemistry Araştırma ve Çalışmaları Enstitüsü, Amity Üniversitesi, NOIDA, Hindistan.
          Virüsler 2018 , 10 (11), 580; https://doi.org/10.3390/v10110580 Geliş: 5 Eylül 2018 / Revize: 9 Ekim 2018 / Kabul: 12 Ekim 2018 / Yayınlanma: 24 Ekim 2018
          (Bu makale HSV Araştırmasında Doğal Ürünlerin Son Gelişmeleri Özel Sayısı'na aittir )

          Öz
          Herpes simpleks virüs-2 (HSV-2) enfeksiyonu, genital ülserlerin en yaygın nedenidir. Ülserlerin etkisi ayrıca insan immün yetmezlik virüsü (HIV) enfeksiyonu ile güçlü bir bağlantı olduğunu gösterir. Antiviral ilaçların komplikasyonları, ilaç direnci ve yan etkileri HSV-2 enfeksiyonunun tedavisini zorlaştırmaktadır. Bitkisel ilaçlar HSV-2 ve HIV enfeksiyonlarına karşı potansiyel göstermiştir. Bu bağlamda, Acacia catechu , Lagerstroemia speciosa , Terminalia chebula ve Phyllanthus emblica'dan % 50 etanolik ekstrakt içeren poliherbal jel formülasyonu geliştirilmiştir. Jel formülasyonu anlamlı ölçüde IC ile iki HIV-1 ve HSV-2 enfeksiyonları karşı virüsidal aktivite göstermiştir 50Sırasıyla 55,93 ± 5,30 µg / mL ve 27,26 ± 4,87 µg / mL. Aynı zamanda, bir IC ile Vero hücrelerinde HSV-2 eki ve penetrasyon inhibe 50 önemli ölçüde asiklovir daha düşük olan, sırası ile = 46.55 ± 1.25 ng / mL ve 54.94 ± 2.52 ug / ml. Bununla birlikte, asiklovir, IC ile enfeksiyon sonrası testinde daha güçlü olan 50 = 0.065 ± 0.01 ug / ml jel formülasyonu gösterdi, oysa bir IC 50= 469.05 ± 16.65 µg / mL, benzer koşullar altında. Jel formülasyonu, laktobasillerin, insan vajinal keratinosit hücrelerinin (Vk2 / E6E7) ve Caco-2 hücrelerinin tek tabakasının bütünlüğünün canlılığı üzerinde hiçbir inhibitör etki göstermedi. Jel formülasyonu, proinflamatuar sitokinlerin sekresyonunda ve mutajenik indekste önemli bir artışa yol açmadı. Önerilen jel formülasyonu, cinsel yolla bulaşan HIV-1 ve HSV-2'nin önlenmesi için ümit verici bir aday mikrobisid olabilir.
          Anahtar Kelimeler: anti-HSV-2 aktivitesi ; anti-HIV-1 aktivitesi ; bitkisel jel formülasyonu ; laktobasilin canlılığı ; Proinflamatuar sitokinler

          1. Giriş
          Son otuz yılda, herpes simpleks virüsü 2 (HSV-2) ve insan immün yetmezlik virüsü 1 (HIV-1) salgınlarında karmaşık bir ilişki gösterilmiştir [ 1 , 2 ]. HSV-2 ve HIV-1 ortak bir cinsel yolla bulaşma yolunu paylaşır. Kişi zaten HSV-2 ile enfekte ise, HIV-1 enfeksiyonuna yakalanma riski artar [ 2 ]. HIV ile enfekte hastalar gibi bağışıklığı zayıf kişilerde semptomatik ve asemptomatik HSV-2 enfeksiyonu daha sıktır. HSV-2 enfeksiyonu, genital ülserlerin en yaygın nedenidir ve kadınlar arasında dünya çapında önemli morbiditeden sorumludur [ 3 ]. HSV-2, Herpesviridae ailesine ait zarflı bir ds DNA virüsüdür ve ömür boyu enfeksiyona neden olur [2 ]. Son kırk yılda yapılan kapsamlı çalışmalar, HSV-2'ye karşı çeşitli antiviral ajanların keşfedilmesine yol açtı. Tipik antiviral ajanlar arasında asiklovir, valasiklovir (VCV) ve famsiklovir bulunur [ 4 , 5 , 6 ]. Bu ilaçlar virüstatik ve sitotoksiktir ve genellikle tekrarlayan herpes simplex labialis için kullanılır. Bu ilaçların uzun süreli kullanımı, merkezi sinir sistemi komplikasyonları, dişeti hiperplazisi, böbrek yetmezliği, adet döngüsünde değişiklikler ve eklem ağrısı gibi çeşitli yan etkilerin gelişmesine yol açar [ 7 , 8 , 9]. Bir çalışmada, gebeliğin ilk trimesterinde HSV-2 enfeksiyonuna karşı asiklovir topikal krem ​​kullanımı, sıçan embriyosunda zararlı fonksiyonel ve yüzeysel deformitelere yol açmıştır [ 10 ]. Ek olarak, bu ilaçların uzun süre kullanılması da ilaç direncine neden olabilir [ 11 , 12 ]. İmmün sistemi baskılanmış hastalarda, ilaca dirençli HSV mutantları daha şiddetli ve kronik enfeksiyonlara yol açabilir [ 11 ]. Bu yan etkilere rağmen asiklovir hala oldukça etkili bir ilaçtır ve HSV enfeksiyonuna karşı kullanılmaktadır. Ayrıca, DNA helikaz / primaz (H / P) kompleksi, yeni anti-HSV ajanlarının geliştirilmesi için iyi bir hedef olarak tanımlanmıştır [ 13]. ASP2151 gibi H / P kompleksinin yeni inhibitörünün, Faz III klinik çalışmalarda genital HSV tedavisinde etkili olduğu gösterilmiştir [ 14 , 15 ]. Ancak, güvenliğiyle ilgili bazı endişeler dile getirilmiştir [ 16 ]. Bu nedenle, bu yeni tür ilaçların geliştirilmesi, gelecekte güvenlikleri konusunda da ek çalışmalar gerektirecektir. Dolayısıyla, halk sağlığı perspektifinden cinsel yolla bulaşan HSV-2 enfeksiyonunu inhibe etmek için özellikle doğal kaynaklardan yeni ve etkili terapötikler geliştirmek için bir alan vardır. Tıbbi bitkilerden elde edilen doğal ürünler, flavonoidler, tanenler ve peptitler gibi anti-HSV ajanları olarak kullanım için önemli bir yeni molekül kaynağıdır [ 17 , 18 ]. Önceki çalışmalarda, putranjivain A ve pterokarnin A'nın ( sırasıyla Euphorbia jolkini ve Pterocarya stenoptera'dan ) HSV-2 girişine ve replikasyona karşı inhibe edici etkisi gösterilmiştir [ 19 ]. Tıbbi bitkilerde ve bitkilerden elde edilen gıdalardaki polifenoller gibi geniş çapta dağılan ikincil metabolitler, ümit verici anti HSV ajanları olabilir [ 20]. Grubumuzun anti-HIV-1 aktivitesi için tıbbi bitkilerin tanımlanması ve karakterizasyonu ile ilgili önceki çalışmalarda, Lagerstroemia speciosa yapraklarından hazırlanan% 50 etanolik ekstraktın ve Acacia catechu'nun kök kabuğunun güçlü anti-HIV- içerdiği gösterilmiştir. 1 aktivite [ 21 , 22 ]. Phyllanthus bitkilerinden ligninler, triterpenoidler, flavonoidler ve tanenler gibi birçok bileşiğin çeşitli viral enfeksiyonlara karşı güçlü antiviral potansiyele sahip olduğu bildirilmiştir [ 23 ]. T. chebulatanenler (chebulagic asit, chebulinik asit, punikalajin), flavonoidler ve steroller gibi çeşitli fitokonstitüentlere sahiptir ve HIV-1, HSV-1 ve HSV-2 gibi viral enfeksiyonlara karşı inhibe edici aktiviteyi ortaya çıkarmıştır [ 24 , 25 ]. Bu gözlemlere dayanarak, Akasya catechu'nun gövde kabuğundan , Lagerstroemia speciosa yapraklarından ve Terminalia chebula ve Phyllanthus emblica meyvelerinden hazırlanan% 50 etanolik özütlerden oluşan sulu jel formülasyonucinsel yolla bulaşan HIV-1'in önlenmesi için topikal mikrobisid olarak hazırlandı. Bu çalışmada, bu jel formülasyonunun aynı zamanda HSV-2'ye karşı virüsidal özelliğe sahip olup olmadığını ve Vero hücrelerine bağlanmasını ve nüfuz etmesini engelleyip engellemediğini araştırdık. Ek olarak HSV-2 replikasyonunu ve yayılmasını inhibe etme etkinliği, enfeksiyon sonrası deneyde in vitro plak azalması ile de belirlendi. Ayrıca jel formülasyonu, laktobasil ve insan vajinal keratinosit hücre çizgisinin (Vk2 / E6E7) canlılığı ve ayrıca Caco-2 hücreleri tarafından oluşturulan epitelyal tek tabakanın bütünlüğü açısından güvenliği açısından da değerlendirildi. Vk2 / E6E7 hücreleri tarafından proinflamatuar sitokinlerin salgılanması üzerindeki etkisi ve Salmonella typhimurium suşları TA100 ve TA98 kullanılarak mutajenik etkisi de incelenmiştir.

          2. Malzemeler ve Yöntemler
          2.1. Bitki malzemeleri
          Terminalia chebula Retz'in meyveleri . (Aile; Combretaceae; Erişim Numarası, HLL / 04/2013 ), Phyllanthus emblica L. (Aile; Phyllanthaceae; Erişim Numarası, HLL / 02/2013), Lagerstroemia speciosa (L) Pers. (Family; Lythraceae; Accession Number, HLL / 12/2015) ve Acacia catechu (Lf) Wild (Family; Fabaceae; Accession Number, HLL / 11/2015 ) kaynaklı kalp odunu Ayurveda Araştırma Enstitüsü botanik bahçesinden toplanmıştır. Ayush Bölümü, Thiruvananthapuram, Kerala. Kupon örnekleri, HLL Lifecare Limited, Thiruvananthapuram, Kerala, Hindistan'ın Doğal Ürünler Bölümünde saklanmıştır.

          2.2. Bitkilerin% 50 Sulu Etanolik Ekstraktların Hazırlanması
          Acacia catechu'nun hava ve gölgede kurutulmuş kalp odunu, Lagerstroemia speciosa yaprakları ve Phyllanthus emblica ve Terminalia chebula'nın meyveleri öğütücü kullanılarak toz haline getirildi . Öğütülmüş tozun (30 gm) basınçlı ardışık ekstraksiyonu, Hızlandırılmış Solvent Ekstraktörü (ASE 150, DionexInc, Sunnyvale, CA, ABD) kullanılarak 60 ° C'de% 90 durulama hacmi (90 mL çözücü) ile basınç altında (1500 psi) gerçekleştirildi. üç statik döngüde [ 25 , 26 ] 100 mL'lik bir ekstraksiyon hücresinden yıkanmıştır . Çözücü daha sonra bir döner buharlaştırıcıda (Buchi Labortechnik AG, Flawil, İsviçre) buharlaştırıldı ve kurutulmuş özüt, daha ileri çalışmalar için tartıldı.

          2.3. Jel Formülasyonunun Hazırlanması
          Jel formülasyonunu hazırlamak için ilk olarak 2.0 g karbopol 974P NF polimeri (Lubrizol, Brüksel, Belçika) 78.60 mL deiyonize su içinde karıştırıldı. Eş zamanlı olarak ayrı bir tüpte 0.18 gm metilparaben ve 0.02 gm propilparaben, 4.00 mL deiyonize su içerisinde çözündürüldü ve hazırlanan çözelti, karbopol 974P NF polimer jeline ilave edildi. Ek olarak 0.2 gr trietanolamin ve 15.00 mL gliserin de eklendi ve iyice karıştırıldı. Jel formülasyonu, Terminalia chebula , Phyllanthus emblica , Lagerstroemia speciosa ve Acacia catechu'dan hazırlanan% 50 etanolik ekstraktlar eklenerek hazırlanmıştır.gm jel başına 4 mg. Jel formülasyonunun sürülebilirlik, ekstrüde edilebilirlik, pH ve viskozite ile ilgili fiziksel özellikleri çalışıldı [ 27 ].

          2.4. Yüksek Performanslı Sıvı Kromatografi Analizi
          Jel formülasyonunun Ters Fazlı Yüksek Performanslı Sıvı Kromatografisi (HPLC; LC Agilent, Agilent Technologies, Boblingen, Almanya), Reverse Phase XTerra RP 18 kolon (4.6 x 250 mm, 5 um; Waters Corporation, Milford, MA, AMERİKA BİRLEŞİK DEVLETLERİ). Su içinde çözücü asetonitril: metanol: ortofosforik asit gradyanı kullanılarak jel formülasyonlarının çeşitli bileşenleri çözüldü. Asetonitril: metanol: ortofosforik asit 0 dakikada% 5, 15 dakikada% 15, 35 dakikada% 25, ​​40 dakikada% 35, 45 dakikada% 50, 50 dakikada% 15 ve 60–60 dakikada% 5 idi. 70 dk ve 1 mL / dk akış hızında kullanılmıştır. Jel formülasyonu için referans standartları olarak bir chebulagic asit, chebulinik asit, ellagik asit, gallik asit ve kateşin hidrat karışımı kullanılmıştır. 5 mg / mL konsantrasyonda jel formülasyonu, Mobil faz çözücü sisteminde 1 mg / mL standartlar hazırlandı ve analiz için her birinden 20 uL enjekte edildi. Zirveler 272 nm'de tespit edildi. Veriler, açık laboratuar yazılımı (sürüm A.01.05, Agilent Technologies, Santa Clara, CA, ABD) kullanılarak işlendi.

          2.5. Hücreler ve Virüsler
          Vero hücreleri (Afrika yeşil maymun böbrek hücrelerinden türetilmiştir) Ulusal Hücre Bilimi Merkezi, Pune, Hindistan'dan elde edilmiştir. Vero hücreleri kültürlendi ve Dulbecco'nun modifiye edilmiş Eagle ortamında (DMEM; Sigma-Aldrich Inc. St. Louis, MO, ABD) tutuldu. DMEM,% 10 fetal sığır serumu (FBS; Biological Industries, Kibbutz beitHaemeK, İsrail) ve Pen-Strep-Ampho sol [Penisilin (100 ünite / mL), Streptomisin (100 μg / mL) ve Amfoterisin B (250 ng / mL); Biyolojik Endüstriler]. TZM-bl hücreleri (p-galaktosidaz ve lusiferaz raportör genleri ile CD4, CCR5 ve CXCR4'ü eksprese etmek üzere tasarlanmış bir HeLa hücre klonundan türetilmiştir),% 10 FBS ve Pen-Strep-Ampho sol ile desteklenmiş DMEM'de tutulmuştur. VK2 / E6E7 hücreleri Dr. Raina Fichorova'dan (Brigham ve Kadın Hastanesi, Boston, MA, ABD) cömert bir hediyeydi. Vk2 / E6E7 hücresi, normal insan vajinal mukozasından türetilen ölümsüzleştirilmiş bir hücre çizgisidir. Vk2 / E6E7 hücreleri, sığır hipofiz özütü ve epidermal büyüme faktörü (Gibco-Invitrogen, Grand Island, New York City, NY, ABD) ile desteklenen Keratinosit serumsuz ortamda (ker-sfm) muhafaza edildi ve kültürlendi. Caco-2 hücreleri (ATCC-HTB-37; ATCC, Manassas, VA, ABD),% 10 FBS ve Pen-Strep-Ampho sol ile desteklenen Roswell Park Memorial Institute ortamında (RPMI; Sigma-Aldrich Inc.) kültürlendi. HEK-293T hücreleri proviral plazmit DNA klonu pNL ile transfekte edildi Caco-2 hücreleri (ATCC-HTB-37; ATCC, Manassas, VA, ABD),% 10 FBS ve Pen-Strep-Ampho sol ile desteklenen Roswell Park Memorial Institute ortamında (RPMI; Sigma-Aldrich Inc.) kültürlendi. HEK-293T hücreleri proviral plazmit DNA klonu pNL ile transfekte edildi Caco-2 hücreleri (ATCC-HTB-37; ATCC, Manassas, VA, ABD),% 10 FBS ve Pen-Strep-Ampho sol ile desteklenen Roswell Park Memorial Institute ortamında (RPMI; Sigma-Aldrich Inc.) kültürlendi. HEK-293T hücreleri proviral plazmit DNA klonu pNL ile transfekte edildi4.3 (Division of AIDS, Ulusal Alerji ve Bulaşıcı Hastalıklar Enstitüsü, Bethesda, MD, ABD) HIV-1 NL4.3 üretmek için [ 28 ]. HSV-2 G suşu (VR-734), ATCC, Rockville, ABD'den elde edildi. HSV-2 G suşu üretimi için, kültürlenmiş Vero hücreleri enfeksiyon çokluğunda Birimi (PFU), 25-cm / hücre Şekillendirme 0.01 Plak (MOI) enfekte edildi 2 nemlendirilmiş 37 ° C 'de 72 saat boyunca doku kültür şişesi % 5 atmosfer CO 2 . Üç donma / çözme döngüsünden sonra, süpernatan 100,000 rpm'de 30 dakika 4 ° C'de santrifüj ile toplandı ve daha önce tarif edildiği gibi [ 29 ] PFU bazında titre edildi ve kullanılana kadar -80 ° C'de alikotlar halinde saklandı.

          2.6. Sitotoksisite Deneyi
          Geleneksel MTT testi, jel formülasyonunun çeşitli hücreler üzerindeki sitotoksisitesini hafif modifikasyonlarla belirlemek için yapıldı [ 30 ]. Kısaca, tzm-bl hücreleri (8 x 10 3 / çukur), ve Vero hücreleri (1.25 x 10 4 / dalga) içinde 5 gece boyunca 96 oyuklu hücre kültür plakalarında (Greiner Bio-One, GmbH, Frickenhausen, Almanya) içinde büyütüldü % CO 237 ° C'de inkübatör. Ayrıca jel formülasyonu veya Nevirapin veya Asiklovir, iki kopya halinde artan konsantrasyonlarla hücrelere ilave edildi. Negatif kontroller olarak jel bazı ve sadece büyüme ortamına sahip hücreler gibi ek kontroller kullanıldı. İlgili ilaçlar ve jel formülasyonu ile 48 saatlik tedaviden sonra hücreler, MTT alımı için işlendi. Absorbans (OD), mikroplaka spektrofotometre (ELX 800MS; BioTek Instrument Inc., Vermont, ABD) kullanılarak 630 nm'de referans filtre ile 540 nm'de okundu. Yüzde canlılık, tedavi grubunda elde edilen OD'nin ilgili araç kontrolündeki OD'ye bölünmesiyle hesaplandı. hücre hattı Vk2 / E6E7 (6.0 × 10 3/ oyuk) MTT deneyi ile yukarıdaki deneysel koşullar kullanılarak da değerlendirildi.

          2.7. Jel Formülasyonunun Anti-viral Aktivitesi
          2.7.1. Jel Formülasyonunun Anti-HIV-1 Aktivitesi
          Jel formülasyonunun anti-HIV-1 aktivitesi, TZM-bl hücresini kullanan iyi bilinen raportör gen bazlı hücre analizi ile değerlendirildi [ 31 , 32 ]. Tzm-bl hücreleri (5.0 x 10 4 / çukur), 24 oyuklu bir plaka ve gece boyunca ekilmiştir. Ertesi gün, ayrı şişelerde, HIV-1 NL4.30.05 MOI'de (CXCR4 tropik) 37 ° C'de 1 saat süreyle değişen jel formülasyonu veya jel bazı veya Nevirapin konsantrasyonları ile işleme tabi tutuldu. Nevirapin, pozitif bir referans kontrol olarak kullanılırken, negatif kontrol, HIV-1 enfeksiyonu olmayan hücrelerden oluşuyordu. Daha sonra, birleşen TZM-bl hücreleri, önceden muamele edilmiş virüslerle iki kopya halinde enfekte edildi ve 4 saat süreyle inkübe edildi. Hücresiz virüsler, 50 mM soğuk PBS, pH-7.4 ile yıkanarak çıkarıldı. Jel formülasyonu / jel baz ile taze kültür ortamı / Nevirapin virüs bulaşmış hücrelere ilave edildi ve daha sonra% 5 CO içeren nemlendirilmiş bir atmosferde 37 ° C 'de 48 saat süreyle inkübe edildi 2. İnkübasyondan sonra hücreler, PBS ile yıkandı ve 1 x liziz tamponu (Promega Corporation, Madison, WI, ABD) kullanılarak dondurularak eritilerek lize edildi. BrightGlo Luciferase Assay Kit (Promega Corporation) ile lusiferaz aktivitesi, toplanan süpernatanlardan ölçüldü. Lüminesans, 240-740 nm spektral aralıkta Florimetre (BMG Labtech, Cary, NC, ABD) kullanılarak okundu. Sonuçlar, Lm S, Lm NC ve Lm VC'nin sırasıyla örneğin lüminesansını, negatif kontrol ve virüs kontrolünü ifade ettiği aşağıdaki formülle hesaplanan yüzde inhibisyon olarak ifade edildi: 100 - [(Lm S - Lm NC) / (Lm VC - Lm NC) × 100].

          2.7.2. Jel Formülasyonunun Anti-HSV-2 Aktivitesi
          HSV-2 Virüsidal Deneyi
          Jel formülasyonunun HSV2 virüsidal aktivitesi için olan elekte (doğrudan anti-HSV-2 etkinliği) için, Vero hücreleri (8 x 10 4 / oyuk) 24 oyuklu kültür plakaları (Corning Incorporated Costar, NY, ABD) ekilmiştir ve 24 saat büyütüldü. Ertesi gün HSV-2 virüsü (100 PFU / çukur), virüsü doğrudan etkisiz hale getirmek için 37 ° C'de 1 saat süreyle jel formülasyonu / jel bazının ve asiklovirin seri seyreltileri ile önceden inkübe edildi. Daha sonra, ön işleme tabi tutulmuş, HSV-2 virüsü% 5 CO nemlendirilmiş Vero hücreleri, tek-tabakalı, birbirine karışana ilave edildi ve 37 ° C'de 1 saat süreyle inkübe edildi 2atmosfer. İnkübasyondan sonra, enfekte olmuş Vero hücreleri iki kez düz DMEM ile yıkandı ve% 1 düşük erime noktalı (LMP) agaroz içeren üst üste bindirme ortamı ile kaplandı. Plak oluşumu% 5 CO nemli bir atmosferde 37 ° C'de 48 saat inkübasyon sonrasında gözlendi 2 ve hücreler (50 mM PBS içinde),% 10 formaldehid ile sabitlendi. Hücreler,% 0.2 kristal viyole sabitleme sonrası ile boyandı. Yüzde plak azalması, 100 - [(PT / PC) x 100] olarak hesaplandı, burada PT ve PC, sırasıyla jel formülasyonu / jel bazı ve asiklovir varlığında ve yokluğunda plak sayısını belirtir. Test en az malzeme konsantrasyonu, plak sayıları (IC% 50 inhibe etmek için gereken 50 , ilgili doz-yanıt eğrilerinin regresyon analizi ile hesaplandı).

          HSV-2 Eklenti ve Penetrasyon Testi
          Jel formülasyonunun virüs bağlanması üzerindeki etkisi, daha önce tarif edildiği gibi [ 25 ] değerlendirildi. Kısaca, 24 oyuklu plakalarda önceden soğutulmuş Vero hücre tekli katmanları, 4 ° C'de 1 saat süreyle jel formülasyonu / jel bazı ile işleme tabi tutuldu ve 3 saat süreyle 4 ° C'de HSV-2 (100 PFU / oyuk) ile enfekte edildi. Hücreler, bağlanmamış HSV-2'yi çıkarmak için soğuk düz DMEM ile iki kez yıkandı. IC belirlemek için doğrudan anti-viral aktivitesi deneyinde tarif edildiği gibi hücreler ayrıca, tedavi edilen 50. Penetrasyon deneyinde, 24 oyuklu kültür plakasında Vero hücrelerinin önceden soğutulmuş birleşik tek tabakası, bağlanmaya izin vermek için 4 ° C'de 3 saat boyunca HSV-2 virüsü (100 PFU / oyuk) ile inkübe edildi. Farklı konsantrasyonlarda jel formülasyonu / jel bazı veya asiklovir, eski ortam değiştirilerek oyuklara ilave edildi ve virüs penetrasyonunu en üst düzeye çıkarmak için 37 ° C'de 1 saat inkübe edildi. Nüfuz edilmemiş virüsleri etkisiz hale getirmek için, enfekte tek tabakalı kültürler 1 dakika süreyle ılık PBS (pH 3.0) ile işleme tabi tutuldu. Ayrıca hücreler, serumsuz ortam ile üç kez yıkandı ve daha sonra% 1 LMP agaroz ile kaplandı. 48 saat sonra plak sayıları yukarıda tarif edildiği gibi hesaplandı.

          Jel Formülasyonunun enfeksiyon sonrası anti-HSV-2 Aktivitesi
          Bu tahlil, enfeksiyon sonrası plak azaltımı kullanılarak Vero hücre tek tabakasında gerçekleştirildi [ 33 ]. Kısaca, Vero hücreleri (8 x 10 4 , 37 ° / yuva) 24-yuvalı kültür plakaları içinde tohumlandı ve 1 saat boyunca HSV-2 virüsü (100 PFU / göz) ile enfekte ° C,% 5 CO nemlendirilmiş atmosferi altında 2 . (Daha az hesaplanmıştır CC daha farklı konsantrasyonlarını içeren, 37 ° C'de 1 saat sonra, hücreler, taze düz DMEM ile yıkandı ve agaroz% 1 LMP ile kaplanmış 50 değerleri) jel formülasyonunun. Pozitif kontrol olarak asiklovir kullanılmış ve negatif kontrol olarak jel bazlı agar örtücü kullanılmıştır. 48 saat inkübasyondan sonra plakalar boyandı ve virüsidal aktivite deneyinde tarif edildiği gibi plak sayısı sayıldı.

          2.8. Jel Formülasyonunun Güvenlik Çalışmaları
          2.8.1. Lactobacilli Üzerindeki Jel Formülasyonunun Sitotoksisitesi
          Jel formülasyonunun / jel bazının farklı laktobasil suşları üzerindeki sitotoksisitesi, daha önce tarif edildiği gibi MTT testi ile değerlendirildi [ 34 , 35 ]. Lactobacilli suşları; Lactobacillus casie (MTCC 1423), L. fermentum (MTCC 903), L. plantarum (MTCC 4462) ve L. rhamnosus (MTCC 1408), Hindistan, Chandigarh'daki Institute of Microbial Technology'den temin edilmiş ve MRS'de (De Man, Rogosa ve Sharpe) et suyu ortamı (HiMedia Chemicals, Mumbai, Hindistan). Bu testte, 30 μL / kuyu bakteriyel süspansiyon (yaklaşık 10 8CFU / mL), 96 oyuklu plakalarda 6,25-50 mg / mL arasında değişen farklı konsantrasyonlarda jel formülasyonu / jel bazı (70 µL / oyuk) ile inkübe edildi. Ampisilin (0.1 mg / mL) içeren bakteri hücreleri pozitif kontrol olarak kullanıldı. İnkübasyondan sonra hücreler, MTT deneyi için işlendi ve sonuçlar, sağkalım yüzdesi olarak ifade edildi; bu, tedavi edilen hücrelerin emiliminin, işlem görmemiş hücrelere 100 ile çarpılmasıyla hesaplandı.

          2.8.2. Epitelyal Katman Bütünlüğü Direnç Testi
          Jel formülasyonunun sağlam bir epitel tutma yeteneği üzerindeki etkisi, Milli hücre-ERS (elektriksel direnç sistemi) voltmetre kullanılarak transepitelyal direnç (TER) ölçülerek belirlendi [ 21 ]. Caco-2 hücreleri (5 x 10 5 transwells yetiştirilmiştir iyi hücre /) (Corning Incorporated, Costar) sıkı bağlantı yerleri meydana getirmek ve kültür ortamı, her bir bazolateral bölmeye dağıtılmıştır. Apikal ve bazolateral ortam değiştirildi ve TER günlük olarak Millicell-ERS cihazı (Millipore Corporation, Billerica, MA, ABD) ile ölçüldü. Plato TER ulaşıldığında, jel formülasyonu / jel tabanı (5 mg / ml) kültür ortamı içinde ilave edildi ve hücreler,% 5 CO nemli bir atmosferde kuluçkaya bırakıldı 237 ° C'de. TER, 0 dakika ve 1, 2, 4, 8 ve 24 saatte ölçüldü. Triton X-100 (% 0.1) pozitif kontrol olarak kullanıldı.

          2.8.3. Pro-inflamatuar Sitokinler Deneyi
          Jel formülasyonunun enflamatuar yanıtını incelemek için insan vajinal keratinosit hücreleri (Vk2 / E6E7) kullanıldı [ 36 ]. VK2 / E6E7 hücreleri (6.0 x 10 3 de hücre /), 96 oyuklu bir kültür plakasına tohumlandı ve% 5 CO nemli bir atmosferde kuluçkaya bırakıldı 2 , 24 saat boyunca 37 ° C'de karıştırıldı. İnkübasyondan sonra hücreler, 24 saat boyunca jel formülasyonu / jel bazı (1 mg / mL) ile işleme tabi tutuldu. Ek kontrol, herhangi bir işlem görmemiş hücreleri içeriyordu. Daha sonra, kültür süpernatantları toplandı ve IL-1β, IL-6, IL-8, IL-10, IL-12p70 ve TNF gibi çeşitli proinflamatuar sitokinler BD TM kullanılarak nicelendirildi. Üreticinin talimatlarına ve BD FACS Diva yazılımı kullanılarak analiz edilen verilere göre Sitometrik Boncuk Dizisi Kiti (BD FACS Canto Akış Sitometresi; BD Biosciences, San Jose, CA, ABD).

          2.8.4. Jel Formülasyonunun Mutajenik Etkisi
          Jel formülasyonunun mutajenik etkisi, Salmonella typhimurium suşları TA98 ve TA100 üzerinde değerlendirildi . Vogel-Bonner aracı maddesi E plakaları (% 1.5 ağar,% 2.0 glukoz) agar (40 mM MgSO 4 , 520 mM sitrik asit, 2.87 MK 2 HPO 4 , 0.87 M NaHNH 4 ) Standart prosedür [göre hazırlanmıştır 37 ]. Salmonella typhimurium yani. TA98 ve TA100 (Microbial Type Culture Collection & Gene Bank, Institute of Microbial Technology, Chandigarh, Hindistan'dan elde edildi) gece boyunca 37 ° C'de Nutrient Broth içinde büyütüldü. Jel formülasyonu / jel bazı (1 mg / ml) Salmonella kültürü (1 x 10 ile inkübe edilmiştir 6hücre / mL) 2.0 mL içinde ve çalkalamadan 20 dakika 37 ° C'de inkübe edildi. Sodyum azid (2.5 μg / mL) ve 4-nitro-o-phenylenediamine (2.5 μg / mL) sırasıyla TA100 ve TA98 için pozitif kontroller olarak kullanıldı. Daha sonra, histidin (0.05 mM) ve biotin (0.05 mM) ile takviye edilmiş 2.0 mL erimiş üst agar (% 0.8 agar,% 0.5 NaCl) her bir tüpe döküldü, hızla karıştırıldı ve agar plakasının üstüne döküldü. Plakalar 37 ° C'de 48-72 saat daha inkübe edildi ve koloni sayısı sayıldı. Sonuçlar, plaka başına geri dönen kolonilerin sayısı olarak ifade edilir. 2.9. İstatistiksel analiz

          Değerler, ikili olarak gerçekleştirilen üç / dört bağımsız deneyin ortalama ± standart hata ortalaması (SEM) olarak ifade edilir. CC belirlenmesi için 50 ve IC 50 değerleri, konsantrasyon-tepki eğrileri doğrusal olmayan regresyon GraphPad Prism 4 (GraphPad Software Inc., CA, ABD) kullanılarak elde edildi. Jel formülasyonunun varlığında farklı analizlerde elde edilen değerlerin hücre kontrolü veya jel bazına göre istatistiksel önemi, tek yönlü varyans analizi (ANOVA) testi kullanılarak belirlendi. Post-hoc Bonferroni düzeltmesi, ikiden fazla grup istatistiksel anlamlılık için analiz edildiğinde daha da uygulandı. P <0,05 değeri istatistiksel olarak anlamlı kabul edildi.

          3. Sonuçlar
          Grubumuzdaki çeşitli bitkilerin anti-HIV-1 aktivitesine ve diğer gruplar tarafından bildirilene dayanarak, dört bitki bazlı sulu jel formülasyonu hazırlandı [ 21 , 22 , 23 , 24 ]. Jel formülasyonunun ters fazlı HPLC analizi, gallik asit, kateşin hidrat, kebulagik asit, kebulinik asit ve ellagik aside karşılık gelen zirvelerin referans standartları kullanılarak tanımlandığı çok sayıda zirve ortaya çıkardı ( Şekil 1 ). Jel formülasyonun fiziksel karakterizasyonu • cm / sn, kalıptan çekilebilirlik, 1.5 ± 0.1 g / cm '4.6 ± 0.1 g bunun yayılabilirliğini gösterdi 2 ve viskozite sırasıyla • s 1800 ± 6.9 MPa oldu. PH değeri 3.69 ± 0.1 idi.

          Şekil 1. Dört bitki bazlı jel formülasyonunun Yüksek Performanslı Sıvı Kromatografisi (HPLC) profili. Dört bitki jel formülasyonu, Malzemeler ve Yöntemler bölümünde açıklandığı gibi RP 18 kolon kullanılarak ters fazlı HPLC ile çözüldü . X ekseni zamanı (dakika) ve Y ekseni 272 nm'deki voltajı (mAU) temsil eder. Gallik asit, kateşin hidrat, kebulagik asit, kebulinik asit ve ellagik aside karşılık gelen zirveler, çalışma standartları ile belirlendi.

          3.1. Jel Formülasyonu, Güçlü anti-HIV-1 ve HSV-2 Aktivitelerine Sahiptir
          Jel formülasyonunun anti-HIV-1 aktivitesini değerlendirmeden önce, TZM-bl hücreleri üzerindeki sitotoksisitesi, MTT deneyi kullanılarak değerlendirildi. CC 50 jel formülasyonunun değeri 7086,00 ± 878.00 ug / ml olmuştur. Jel formülasyonu, HIV-1'e karşı bağımlı bir anti-HIV-1 aktivitesi doz gösterdi NL4.3 bir IC virüs suşu 50 55.93 ± 5.30 ug / ml ( Şekil 2 ). Tedavi edici indeks (Tl = C 50 / IC 50 ) benzer deneysel koşullar altında, anti-HIV-1 aktivitesi için jel formülasyonunun olduğu 126. 31200 ug / mL kadar test edilen jel bazı HIV-1 <% 20 inhibisyon olduğunu ortaya çıkarmıştır pozitif kontrol olarak Nevirapin (2 μg / mL) ile tedavi kullanıldığında, HIV-1 aktivitesinin ~% 100 inhibisyonu ile sonuçlanmıştır (Şekil 2 ).

          Şekil 2. Jel formülasyonunun anti-HIV-1 aktivitesi. Tzm-bl hücreler% 5 CO nemli bir atmosferde 37 ° C 'de bir gece kültürlenmiştir 2 , HIV-1 ile enfeksiyon, ardından NL4.3 enfeksiyon çokluğu varlığında ya da jel formülasyon yokluğunda 0.05 (MOI) ve tespiti için işlemden Malzemeler ve Yöntemler bölümünde açıklanan anti-HIV-1 aktivitesinin. Pozitif kontrol olarak nevirapin (2 µg / mL) ve negatif kontrol olarak jel bazı (31,200 µg / mL) kullanıldı. Y ekseni, HIV-1 enfeksiyonunun yüzde inhibisyonunu temsil eder ve X ekseni, jel formülasyonunun değişen konsantrasyonlarını temsil eder. Veriler, kopyalar halinde gerçekleştirilen 3 farklı deneyin ortalama ± SEM'i olarak ifade edilir. Jel formülasyonunun önemi, Nevirapin ve jel baz, muamele edilmemiş kontrole göre tek yönlü varyans analizi (ANOVA) ile hesaplandı. * p <0.05, ** p <0.005.
          CC 50 jel formülasyonunun değeri 2474,90 ± 293.80 ug / mL Vero hücreleri karşısında. Virüsidal aktiviteyi değerlendirmek için, HSV-2 virüsünün doğrudan inaktivasyonu, tek tek bitkilerin% 50 etanolik özütünün yanı sıra jel formülasyonunun varlığında test edildi ( Tablo 1 ). Terminalia chebula'dan hazırlanan ekstrakt ile en yüksek anti-HSV-2 aktivitesi gözlendi . Jel formülasyonu ayrıca hayvanlar anlamlı bir IC ile HSV-2'nin in vitro enfeksiyon düşük 50 27.26 ± 4.87 ug / mL (değerinin Tablo 1 ). Bunun aksine, asiklovir, bir IC jel formülasyonuna göre bir virüsidal aktivitesi azalma görülmüştür 50= 124,55 ± 6,05 µg / mL. 125 µg / mL'ye kadar test edildiğinde jel bazı, HSV-2 enfeksiyonunun sadece% 5,9 ± 1,2 inhibisyonunu gösterdi ( Tablo 1 ).
          Tablo 1. Vero hücreleri ve virüsidal deneyde anti-HSV-2 aktiviteleri kullanılarak farklı bitkilerden ve jel formülasyonundan hazırlanan% 50 etanolik ekstraktların sitotoksisitesi.

          3 Ek Farklı Jel Formülasyon Serisinin Doğrudan HSV-2 Virüsidal Aktivitesi
          Farklı jel formülasyon partilerinin anti-HSV-2 ve anti-HIV-1 aktivitelerinde tutarlı bir şekilde hazırlanıp hazırlanamayacağını incelemek için; üç ek farklı parti jel formülasyonu hazırlandı. Virüsidal deneyde anti-HIV-1 aktivitesi ve anti-HSV-2 aktivitesi Tablo 2'de gösterilmektedir . Jel formülasyonunun üç partisinin tümü, güçlü anti-HIV-1'in yanı sıra anti-HSV-2 aktiviteleri gösterdi. Post-hoc Bonferroni düzeltme testi ile yapılan analiz, bu üç farklı jel formülasyonunun anti-HIV-1 ve anti-HSV-2 aktivitelerinde herhangi bir önemli fark ortaya koymadı.
          Tablo 2. Üç ek farklı jel formülasyon serisinin Anti HSV-2 ve HIV-1 aktiviteleri.


          3.2. Jel Formülasyonunun HSV-2 Eklenmesi ve Vero Hücrelerine Penetrasyon Üzerindeki Etkinliği
          Vero hücreleri HSV-2 virüsü inhibe in vitro bağlanma jel formülasyonunun etkisi, IC ile birlikte, doza bağlı bir azalma ortaya koymuştur 50 değeri ug / mL (46.55 ± 1.25 Şekil 3 a). Bununla birlikte asiklovir, 100 ug / mL konsantrasyonda test edildiğinde, HSV-2'nin Vero hücrelerine bağlanmasında, gözlemlenen plak sayısının gösterdiği gibi, yalnızca% 19.36 ± 0.43 inhibisyon gösterdi. Negatif kontrol olarak kullanılan jel bazı, jel formülasyonundan önemli ölçüde daha düşük olan 100 ug / mL'de% 26.61 ± 0.57 inhibisyon gösterdi.

          Şekil 3. Jel formülasyonunun HSV-2'nin Vero hücrelerine bağlanması ve nüfuz etmesi üzerindeki etkisi. Jel formülasyonunun HSV-2 bağlanması ve Vero hücrelerine nüfuz etme üzerindeki etkisi, Materyaller ve Yöntemler bölümünde açıklandığı gibi değerlendirildi . ( Panel a ), HSV-2'nin Vero hücrelerine bağlanması üzerindeki jel formülasyonunun etkisini temsil etmektedir. Vero hücrelerinin önceden soğutulmuş tek tabakası, HSV-2 (100 PFU) ile çeşitli jel formülasyonu / jel bazı / asiklovir konsantrasyonları ile birlikte 3 saat süreyle inkübe edildi, ardından Malzemeler ve Yöntemler'de açıklandığı gibi plak oluşumunun belirlenmesi için işlendi . Y ekseni, HSV-2 enfeksiyonunun yüzde inhibisyonunu temsil eder ve X ekseni, jel formülasyonu / jel bazı / asiklovir konsantrasyonunu temsil eder. ( Panel b), jel formülasyonunun HSV-2'nin Vero hücresine nüfuzu üzerindeki etkisini temsil eder. Vero hücrelerinin önceden soğutulmuş birleşik tek tabakası 4 ° C'de 3 saat süreyle HSV-2 (100 PFU) ile inkübe edildi, ardından jel formülasyonunun / jel bazının / asiklovirin değişen konsantrasyonları ile inkübe edildi ve ardından plak değerlendirmesi için işlendi oluşumu. ( Panel a ve b ) 'deki değerler, ikili olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'i olarak ifade edilir. Jel formülasyonunun ilgili konsantrasyonunda işlenmiş ve işlenmemiş kontrol arasında * p <0.05, ** p <0.005.
          Jel formülasyonunun, HSV-2'nin Vero hücrelerine bağlanmasını ve bunun HSV-2'ye karşı potansiyel virüsidal aktivitesini önemli ölçüde inhibe etme etkisini gözlemledikten sonra, ayrıca anti HSV-2 penetrasyon deneyi gerçekleştirdik. Elde edilen sonuçlardan, bir IC jel formülasyonu ile Vero hücrelerinde HSV-2 penetrasyon, konsantrasyon bağımlı bir inhibisyon gözlenmiştir 50 54.94 ± 2.52 ug / mL değerinde. Jel formülasyonu ile karşılaştırıldığında, test edilen tüm konsantrasyonlarda jel bazı, HSV-2'nin Vero hücrelerine penetrasyonunda önemli ölçüde daha az inhibisyon gösterdi ve 500 ug / mL'de% 44.4 ± 2.4 inhibisyon gösterdi ( Şekil 3 b). 500 ug / mL'deki asiklovir, HSV-2'nin Vero hücrelerine penetrasyonunda yalnızca% 37.05 ± 1.55 inhibisyon gösterdi.

          3.3. Jel Formülasyonu, Enfeksiyon Sonrası Testte HSV-2 Replikasyonunu Azaltmada Asiklovire Göre Daha Az Etkili oldu
          Jel formülasyonunun yanı sıra asiklovirin HSV-2 replikasyonu ve yayılabilirliği üzerindeki önleyici etkisi, enfeksiyon sonrası plak azaltma deneyi kullanılarak değerlendirildi. Asiklovir IC ile HSV-2 replikasyon doza bağımlı kuvvetli engelleme gösterdiğini 50 0.065 ± 0.01 ug / ml (değerinin Şekil 4 b) '. IC ile HSV-2 replikasyonu ve yayılabilirlik inhibisyonunda asiklovir ile karşılaştırıldığında Bununla birlikte, jel formülasyonu 7193 kat daha düşük aktivite gösterdi 50 = 469,05 ± 16.65 ug / ml ( Şekil 4 a).

          Şekil 4. Jel formülasyonunun, Vero hücrelerinde HSV-2 replikasyonu ve yayılması üzerindeki etkisi. 24 oyuklu kültür plakasındaki Vero hücrelerinin tek tabakası, HSV-2 (100 PFU / oyuk) ile enfekte edildi ve bunu, Malzemeler ve Yöntemler bölümünde tarif edildiği gibi jel formülasyonunun ve asiklovirin değişen konsantrasyonlarını içeren% 1 düşük erime noktalı agaroz örtücü ortam izledi . ( Panel a ) HSV-2 ile plak oluşumunu inhibe etmek için jel formülasyonunun yanı sıra farklı konsantrasyonlarda jel bazının etkinliğini temsil etmektedir. ( Panel b) asiklovirin HSV-2 replikasyonunu inhibe etme etkinliğini temsil etmektedir. Y ekseni, işlenmemiş virüs kontrol grubuna göre plak sayısındaki yüzde inhibisyonu ve X ekseni jel formülasyonu / jel bazı / asiklovir konsantrasyonunu temsil eder. ( Panel a ve b ) ' deki her bir çubuk , çift olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'ini temsil eder. * p <0.05, ** p <0.005, asiklovir / jel formülasyonunun test edilen konsantrasyonunda işlenmiş ve işlenmemiş kontrol arasında sırasıyla.

          3.4. Jel Formülasyonunun Vajinal Laktobasillerin Hayatta Kalması ve Epitelyal Tek Tabakanın Bütünlüğü Üzerinde Olumsuz Etkisi Yok
          Jel formülasyonunun vajinal mikrobisid olarak kullanılması amaçlanıyorsa vajinal laktobasillerin yaşayabilirliği üzerinde herhangi bir olumsuz etkiye sahip olmaması zorunludur. Bu nedenle , Lactobacillus casei , L. fermentum , L. plantarum ve L. rhamnosus gibi çeşitli vajinal lactobacillus suşları , 50 mg / mL'de jel formülasyonu / jel bazı ile inkübe edildi. Laktobasillerin jel formülasyonunun yanı sıra jel bazı ile muamelesi, hayatta kalmaları üzerinde hiçbir yan etki göstermedi ( Şekil 5a). Aksine, ampisilin (0.1 mg / mL) ile tedavi edildiğinde ~% 5 laktobasil yaşıyordu. Vajinal laktobasillere ek olarak, jel formülasyonunun uygulamasında vajinal epitel hücrelerinin bütünlüğü üzerinde herhangi bir olumsuz etkisi olmamalıdır, çünkü topikal mikrop öldürücü ile vajinal epitelin bozulması, koruyucu etkiden ziyade viral enfeksiyonda artışa yol açabilir [ 38 ]. Caco-2 hücrelerinin oluşturduğu tek tabakanın jel formülasyonu (5 mg / mL) ile muamelesi , tedavi edilmeyen hücrelere kıyasla TER'i önemli ölçüde ( p > 0.05) azaltmadı, bu da bu hücrelerin oluşturduğu tek tabakayı ihlal etmediğini düşündürdü. ( Şekil 5b). Negatif kontrol olarak kullanılan jel bazı (5 mg / mL) varlığında da aynı gözlemler yapılmıştır. Bununla birlikte, Triton X-100 (% 0.1), uygulamasının 1 saatinden sonra bile TER'de geri döndürülemez bir azalmaya yol açmıştır ( Şekil 5 b).

          [IMG2=JSON][][/IMG2]
          Şekil 5. Jel formülasyonunun laktobasillerin hayatta kalması ve epitelyal tek tabakanın bütünlüğü üzerindeki etkisi. ( Panel ) Four laktobasil suşları (10 8 CFU / mL) jel formülasyonu / jel bazı (50 mg / ml) varlığında ya da yokluğunda kültürlenir. Ampisilin (0.1 mg / mL), pozitif referans kontrol olarak kullanıldı. Daha sonra hücreler, Materyaller ve Yöntemler bölümünde açıklandığı gibi MTT testi kullanılarak canlılık değerlendirmesi için işlendi . Y ekseni, muamele edilmemiş kontrol ile karşılaştırıldığında hayatta kalma yüzdesini temsil eder ve çift olarak gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'ini temsil eder. ( Panel b), jel formülasyonunun epitelyal tek tabakanın bütünlüğü üzerindeki etkisini temsil eder. Caco-2 hücreleri, stabil tek tabaka oluşturana kadar transwell desteklerde büyütüldü. Jel formülasyonu veya jel bazı (5.0 mg / mL) apikal bölmeye t = 0'da eklendi ve direnç 0, 1, 2, 4, 8 ve 24 saatte ölçüldü. Triton-X (% 0.1) pozitif referans kontrol olarak kullanıldı. Veriler, çiftler halinde gerçekleştirilen üç bağımsız deneyin ortalama ± SEM'i olarak temsil edilir. GF, Jel formülasyonu; GB, Jel tabanı

          3.5. Jel Formülasyonu, Proinflamatuvar Sitokinlerin Salgısında Önemli Bir Artışa Yol Açmaz
          MTT testi kullanılarak vajinal epitel hücreleri üzerindeki jel formülasyonunun toksisitesini belirlemek için insan serviko-vajinal keratinositler (Vk2 / E6E7) hücreleri kullanıldı. CC 50 jel formülasyonu ile görülen araç kontrolü gösterdi CC olarak kullanılan 1.41 ± 0.10 mg / ml ve jel bir temel 50 3.33 ± 0.53 mg / mL. Farklı mikrop öldürücülerin klinik çalışmaları, bunların uygulanmasıyla proinflamatuar sitokinlerin salgılanmasındaki artışın viral enfeksiyona yatkınlığı artırabileceği endişesini artırmıştır [ 39 ]. Vk2 / E6E7 hücrelerinin jel formülasyonu ile muamelesi, hücre kontrolüne kıyasla pro-enflamatuar sitokinlerde önemli bir artış göstermedi. Aksine, IL-6 ve IL-8 seviyesinde önemli bir düşüş gözlendi ( Tablo 3). Jel formülasyonu ile işleme tabi tutulan Vk2 / E6E7 hücreleri tarafından salgılanan insan IL-1p, IL-10, IL-12p70 ve TNF seviyeleri, hücre kontrolüne kıyasla istatistiksel olarak anlamlı değildi ( Tablo 3 ). Hücre kontrolü ve jel bazı ile karşılaştırıldığında jel formülasyonu ile tedavi edilen Vk2 / E6E7 hücreleri tarafından salgılanan insan pro-enflamatuar sitokinlerin seviyelerindeki değişiklikler, post-hoc Bonferroni düzeltme testi kullanıldıktan sonra istatistiksel olarak anlamlı bulunmadı.
          Tablo 3. 24 saat boyunca bitkisel jel formülasyonu ile tedaviden sonra vajinal keratinosit hücreleri (Vk2 / E6E7) tarafından pro-inflamatuar sitokin salgısı.


          3.6. Jel Formülasyonu Mutajenik İndekte Önemli Bir Artış Göstermiyor
          Salmonella typhimurium (TA98 ve TA100 suşları), jel formülasyonu / jel bazı (1 mg / mL) ile işleme tabi tutuldu. Jel formülasyonu, tek başına jel bazı veya ortam ile muamele edilmiş S. typhimurium'un TA98 ve TA100 suşlarına kıyasla mutajenik indekste önemli bir artış göstermedi ( Tablo 4 ). S. typhimurium'un TA100 suşunun sodyum azit ile ve S. typhimurium'un TA98 suşunun, ilgili pozitif kontroller olarak kullanılan 4-nitro-o-fenilendiamin ile muamelesi , mutajenik indekste bir artışa yol açtı, bu istatistiksel olarak anlamlıydı ( Tablo 4 ).
          Tablo 4. Jel formülasyonu ile muamele edilmiş S. typhimurium suşları TA100 ve TA98'de mutagenez .

          4. Tartışma
          HSV-2 ile enfeksiyon tekrarlayan genital lezyonlara neden olur ve bu nedenle HIV enfeksiyonu riskini ve şiddetini artırır [ 40 , 41 ]. Sonuç olarak, cinsel yolla bulaşan HIV-1 ve HSV-2'nin bulaşmasını önlemek için topikal mikrobisitlerin geliştirilmesi arzu edilir. Doğal ürünler, anti-HSV-2 ve anti-HIV-1 ajanları olarak kullanım için önemli bir yeni molekül kaynağıdır ve bu nedenle tıbbi bitkiler kullanılarak jel formülasyonunun geliştirilmesi, etkili bir alternatif tedavi seçeneği sağlayabilir. Burada açıklanan jel formülasyonu, in vitro HIV-1 ve HSV-2 enfeksiyonlarının inhibe edilmesinde etkili olan Acacia catechu'nun kök kabuğu, Lagerstroemia speciosa yaprakları ve Terminalia chebula Retz ve Phyllanthus emblica meyvelerinin etanolik ekstraktlarından oluşuyordu . Vajinal yüzeyin daha iyi kaplanması için topikal uygulama sırasında jellerin yüksek yayılabilirliği arzu edilir. Ek olarak, jel formülasyonunun aktif gradyanlarının, minimum sızıntı ile dişi üreme yolunun mukozal tabakası üzerinde tutulması arzu edilir. Bunu göz önünde bulundurarak, yayılabilirliği, yüksek viskoziteli ve kıvamlı kaplama özellikleri nedeniyle bitkisel jel formülasyonunun hazırlanmasında Carbopol 974P NF polimer kullandık [42 , 43 ], bunlar da mevcut jel formülasyonunda gözlenmiştir. Carbopol bazlı vajinal jelin ayrıca HSV ve C. trachomatis enfeksiyonlarına karşı koruma gösterdiği bildirilmiştir [ 43 ]. Vajinal ortam asidik bir pH'ı korur; bu nedenle vajinal mikrobisid ürününün başarılı bir şekilde geliştirilmesi, aktif bileşenlerin asidik koşullarda stabil olmasını gerektirir. Jel formülasyonunun pH'ı da değerlendirildi ve vajinal ortamın asidik durumunu destekleyen doğası gereği asidik (pH = 3.69) olduğu bulundu. Burada bildirilen jel formülasyonu, çeşitli kozmetik ve kişisel bakım ürünlerinde koruyucu olarak kullanılan propilparabenin yanı sıra% 0,2'den az metilparaben içerir [ 44]. Burada bir yüzey aktif madde veya pH ayarlayıcı olarak kullanılan trietanolaminin (TEA) (% 0,2), çeşitli kozmetik ürünlere dahil edildiğinde güvenli olduğu gösterilmiştir [ 45 , 46 ]. Mevcut jel formülasyonunda kullanılan gliserinin yara iyileşmesine yardımcı olduğu, bakteri üremesini engellediği ve nemlendirici görevi gördüğü gösterilmiştir [ 47 , 48 ]. Tedavi seçeneklerinden biri olarak jel formülasyonunu hazırlamanın fizibilitesi, önemli ölçüde değişmeyen üç farklı jel formülasyon serisinin güçlü anti-HIV-1 ve anti-HSV-2 aktiviteleri ile gösterilmiştir ( Tablo 2 ). Jel formülasyonunun anti-HIV-1 aktivitesi, HIV-1 enfeksiyonuna karşı etkili olabilecek gallik asit, ellagik asit, kateşinler ve tanenler gibi çeşitli fito-bileşiklere bağlı olabilir [ 21 , 22 ]. Kateşinler, A. catechu'nun önemli bir bileşenidir ve HIV-1 enfeksiyonunu inhibe ettiği gösterilmiştir [ 21 ]. Ek olarak, bir galloyl parçası içeren kateşinler, NF-kB ve kazein kinaz II (CK2) dahil olmak üzere konakçı hücre faktörlerini etkileyerek HIV-1 enfeksiyonunun inhibisyonuna neden olabilir [ 49 , 50 ]. Diğer araştırmalarda, L. speciosa'dan ellagik asit ve gallik asit, T. chebula'dan punicalgin ve chebulagic asitanti-HIV-1 özelliklere sahip olduğu bildirilmiştir [ 22 , 51 ]. Anti-HIV-1 aktivitesine ek olarak, jel formülasyonu ayrıca HSV-2 virüsünü virüsidal aktivite ile doğrudan öldürmek için önemli bir potansiyel gösterdi. Jel formülasyonu, bir IC gösterdi 50 temel olarak ilgili bitki ekstrelerinin ng ~ 109 müteşekkil virüsidal deneyde, anti-HSV-2 aktivitesi için = 27.26 ± 4.87 ug / ml. Ekstre bazında jel formülasyonu, P. emblica ve ayrıca L. speciosa'dan hazırlanan bitki özlerine kıyasla daha güçlü anti-HSV-2 aktivitesine sahiptir . Bununla birlikte, jel formülasyonunun anti-HSV-2 aktivitesi, A. catechu'nun gövde kabuğundan ve L. speciosa yapraklarından elde edilen özütlere kıyasla daha düşüktü . L. speciosa yapraklarından elde edilen ekstraktgüçlü anti-HIV-1 aktivitesine sahip olduğu için jel formülasyonuna dahil edilmiştir [ 22 ]. Aynı zamanda anti-HIV-1 aktivitesi gösteren P. emblica'dan elde edilen özüt (veriler gösterilmemiştir), güçlü antioksidatif ve antiinflamatuvar özelliklere sahip olduğu için [ 52 , 53 ], bunlar aynı zamanda yapım sırasında önemli hususlar olarak dahil edilmiştir. topikal uygulama için iyi bir formülasyon. Jel formülasyonu ayrıca HSV-2 virüsünün Vero hücrelerine bağlanmasını ve nüfuz etmesini önemli ölçüde inhibe etti. Phyllanthus emblica'ya dayalı geleneksel Çin ilaçlarından izole edilmiş polifenolik bileşiklerL.'nin HSV-1 ve HSV-2 enfeksiyonlarını inhibe ettiği bulunmuştur. Bu çalışmalar, HSV-1 / HSV-2 tarafından polifenolik bileşikler tarafından erken enfeksiyonun başarısızlığının, viral bağlanma ve penetrasyon dahil olmak üzere virüs partiküllerinin doğrudan inaktivasyonuna bağlı olabileceğini ortaya koymuştur [ 51 , 54 ]. Jel formülasyonunun virüsidal aktivitesi açısından anti-HSV-2 aktivitesi ve Vero hücrelerine bağlanma ve penetrasyonun inhibisyonu, T. chebula ekstraktında bulunan chebulagic asit ve chebulinik asit gibi tanenlerin varlığı ile de katkıda bulunabilir [ 25 ]. Bir başka Terminalia türü olan T. arjuna Linn, hidrolize edilebilir bir tanen olan casuarinin içerir ve HSV-2'ye karşı güçlü virüsidal aktivite göstermiştir [ 55]. Heparan sülfat ve kondroitin sülfat mutant hücre hatları, chebulagic asit ve punikalajinin antiviral aktivitesinde azalma gösterdi; viral membranın parçalanması [ 56 , 57 ]. Asiklovir, mikrogram konsantrasyon aralığında HSV-2'nin Vero hücrelerine girmesinin yanı sıra bağlanmayı önemli ölçüde inhibe etmekte başarısız oldu; bu, esas olarak virüs replikasyonunu inhibe ederek hücre içi olarak çalıştığı gerçeğinden kaynaklanıyor olabilir [ 58]. Aslında asiklovir, enfeksiyon sonrası HSV-2 replikasyonunu çok verimli bir şekilde inhibe etti ve diğer hücrelere yayıldı; bu, jel formülasyonuna kıyasla yaklaşık 7200 kat daha yüksekti ( Şekil 4b). Bununla birlikte, jel formülasyonu ayrıca HSV-2'nin sitotoksik konsantrasyonunun altındaki enfeksiyon sonrası aktivitesini de inhibe etti ( Şekil 4a). Bitki özütlerinde bulunan hidrolize edilebilir tanenlerin yüksek moleküler ağırlığı nedeniyle, bu bileşenlerin Vero hücrelerine girememesi ve dolayısıyla hücre içi virüs replikasyonunun güçlü inhibisyonunu göstermemesi muhtemeldir. Jel formülasyonunun enfeksiyon sonrası HSV-2 replikasyonunu inhibe etmek için daha düşük aktivitesi, bu ekstrelerin, hücrelere girebilen veya alternatif olarak, lizizden sonra üretilen virüs tarafından yeni hücrelerin enfeksiyonunu inhibe edebilen bazı küçük moleküler ağırlıklı varlıklar içerebileceğini düşündürür konakçı hücreler. Bununla birlikte, daha küçük boyuttan dolayı asiklovir, konak hücre enzimleri kullanılarak asiklovir trifosfata dönüşerek viral DNA polimerazı inhibe ederek hücrelere girebilir ve HSV-2 replikasyonunu inhibe edebilir. [ 59 ]. Cinsel yolla bulaşan HIV-1'in yanı sıra HSV-2 enfeksiyonlarını önlemek için intravajinal uygulama için topikal mikrobisitler, formüle edilmiş ürünlerin vajinal laktobasillere toksik olmamasını gerektirir. Bu çalışmada kullanılan dört laktobasil türü menopoz öncesi kadınlarda baskın türler arasındadır [ 60 ]. Jel formülasyonu, dört laktobasilinin tamamının hayatta kalması üzerinde hiçbir olumsuz etki göstermedi ( Şekil 5 a). Önceki çalışmalara göre, A. catechu ve P. emblica'nın da bileşenleri olan kateşinler ve polifenol bileşikleri, laktobasil büyümesini uyarmıştır [ 61 , 62 ]. Nonoksinol-9 içeren mikrop öldürücünün klinik deneylerinden birçok endişe dile getirilmiştir. Nonoksinol-9 içeren mikrop öldürücü, servikovajinal epitelde bozulmaya ve artmış proinflamatuvar sitokin salgılanmasına neden olarak HIV-1 enfeksiyonunun duyarlılığını artırma olasılığı daha yüksektir [ 63 ]. Bu doğrultuda jel formülasyonunun sağlam epitelin bütünlüğü üzerindeki etkisi de transepitelyal direnç (TER) ölçülerek değerlendirildi. Genel olarak, jel formülasyonu (5 mg / mL) TER'i etkilememiştir ve bu nedenle verilerimiz, topikal uygulamada epitel kaplamasını bozmayabileceğini göstermektedir ( Şekil 5b). Ayrıca, topikal ajanlara vajinal yanıtları incelemek için yeterli bir model olduğu kanıtlanan Vk2 / E6E7 hücreleri [ 64] jel formülasyonunun pro-enflamatuar sitokinlerin salgılanması üzerindeki tepkisini incelemek için kullanılmıştır. Hücre kontrolüne kıyasla jel formülasyonu ile Vk2 / E6E7 hücrelerinin işlenmesinde IL-6 ve IL-8 salgısında bir artıştan ziyade bir azalma gözlendi ( Tablo 3 ). IL-6 ve IL-8, artmış bir HIV-1 replikasyonu ile ilişkilidir [ 65 , 66 ] ve sekresyonlarındaki azalma, jel formülasyonunun kullanımının güvenli olabileceğini düşündürür. Proinflamatuar sitokinlerin salgılanmasındaki azalma, daha önce antiinflamatuvar özellikleri nedeniyle bildirildiği için jel formülasyonunda bulunan kateşinlere bağlı olabilir [ 67]. Jel formülasyonunun ve bileşenlerinin vajinal hücreler tarafından yakın teması ve sistemik absorpsiyonu nedeniyle, olası mutajenik etkileriyle ilgili endişeleri artırmaktadır. Jel formülasyonunun mutasyonları indüklemedeki olası etkisini değerlendirmek için bakteriyel ters mutasyon testini de gerçekleştirdik. Histidin gerektiren Salmonella typhimurium suşları, ikame, ekleme veya delesyondan kaynaklanan mutasyonları saptamak için kullanıldı. Bu çalışmada, iki Salmonella suşu kullandık; Baz çifti (bp) ikamelerine bağlı mutasyonları ve çerçeve kaymasına bağlı TA 98'i tespit eden S. typhimurium TA100 [ 68]. Pozitif kontroller olarak kullanılan sodyum azid ve 4-nitro-o-fenilendiamin, ilgili negatif kontrollere kıyasla geri dönen kolonilerin sayısında iki kattan fazla artış ortaya çıkardı. Bununla birlikte jel formülasyonu, geri dönüşlü kolonilerde önemli bir artış göstermemiştir, bu da mutajenite açısından güvenli olduğunu düşündürmektedir ( Tablo 4 ).

          5. Sonuçlar
          Sonuç olarak, burada açıklanan poliherbal jel formülasyonu, güçlü in vitro anti-HIV-1 ve anti-HSV-2 aktiviteleri gösterdi. Jel formülasyonu öncelikle HSV-2'ye karşı virüsidal aktiviteye sahiptir ve bunun konakçı hücrelere bağlanmasını ve nüfuz etmesini inhibe eder. Jel formülasyonu, laktobasillerin hayatta kalması, epitelyal tek tabakanın bozulması, proinflamatuar sitokinlerde artış ve mutajenik indeks üzerinde herhangi bir yan etki göstermemiştir. Bununla birlikte, insanlarda cinsel yolla bulaşan HSV-2 enfeksiyonunu inhibe etmek için etkinlik çalışmaları başlatılmadan önce kadınlarda ek güvenlik çalışmaları yapılmalıdır. Yazar Katkıları

          NNM, AK ve AA çeşitli deneyler yaptı; NNM el yazmasını yazdı; SKP ve RN, jel formülasyonunu hazırlar ve karakterize eder; SKG projeyi tasarladı, sonuçları yorumladı ve taslağı düzenledi.
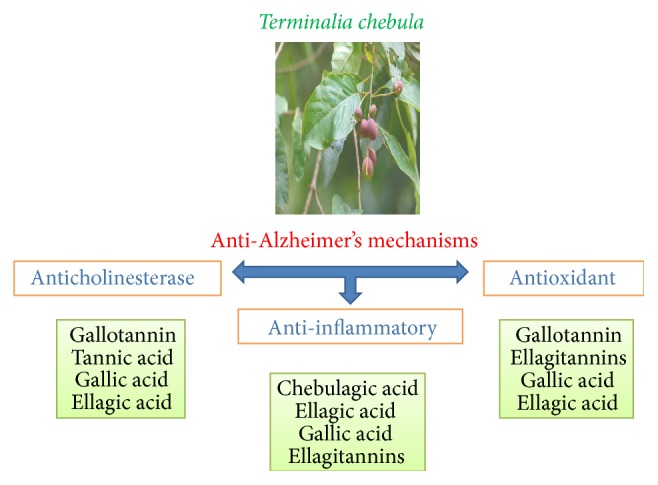
          Finansman
          Hindistan Hükümeti Bilim ve Mühendislik Araştırma Kurulu, Bilim ve Teknoloji Bölümü tarafından SKG'ye JC Bose Ulusal Bursu (SB / S2 / JCB040 / 2015) kabul edildi. Ulusal İmmünoloji Enstitüsü, Yeni Delhi, Hindistan ve HLL-Lifecare Limited, Thiruvananthapuram, Kerala'nın mali desteği de kabul edildi.

          Teşekkür
          Yeni Delhi Ulusal İmmünoloji Enstitüsü Reproductive Cell Biology Lab, Technician I, Technician I Rajit Ram ve kültür ortamının hazırlanması ve hücre kültürü tesisinin bakımı konusunda yardım sağlayan Rajit Ram'a teşekkür ederiz.

          Çıkar çatışmaları
          Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

          Referanslar
          1. Wasserheit, JN Epidemiyolojik sinerji. İnsan immün yetmezlik virüsü enfeksiyonu ile cinsel yolla bulaşan diğer hastalıklar arasındaki ilişkiler. Seks. Transm. Dis. 1992 , 19 , 61–77. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          2. Nag, S .; Sarkar, S .; Chattopadhyay, D .; Bhattacharya, S .; Biswas, R .; SenGupta, M. Risk faktörü analizi ile Doğu Hindistan'daki HIV ile birlikte enfekte kişilerde herpes simpleks virüsü enfeksiyonunun seroprevalansı. Adv. Virol. 2015 , 2015 , 537939. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          3. Whitley, RJ; Roizman, B. Herpes simpleks virüs enfeksiyonları. Lancet 2001 , 357 , 1513–1518. [ Google Akademik ] [ CrossRef ]
          4. Gopal, MG; Shannoma; Sharath Kumar, BC; Ramesh, M .; Nandini, AS; Manjunath, NC Herpes zoster yönetiminde asiklovir ve famsiklovirin etkililiğini ve güvenliğini değerlendirmek için karşılaştırmalı bir çalışma. J. Clin. Teşhis. Res. 2013 , 7 , 2904–2907. [ Google Scholar ] [ PubMed ]
          5. Bonnar, PE Genital herpes bulaşmasını azaltmak için baskılayıcı valasiklovir tedavisi: İyi bir halk sağlığı politikası? Mcgill J. Med. 2009 , 12 , 39–46. [ Google Scholar ]
          6. Simpson, D .; Lyseng-Williamson, KA Famciclovir: Herpes zoster ve genital ve orolabial herpeste kullanımına ilişkin bir inceleme. İlaçlar 2006 , 66 , 2397–2416. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          7. Haefeli, BİZ; Schoenenberger, RA; Weiss, P .; Ritz, RF Asiklovir kaynaklı nörotoksisite: Asiklovir doz aşımında konsantrasyon-yan etki ilişkisi. Am. J. Med. 1993 , 94 , 212–215. [ Google Akademik ] [ CrossRef ]
          8. Durglishvili, N .; Shishniashvili, D .; Kvirkvelia, V. Valasiklovir ile genital herpesin uzun süreli baskılayıcı tedavisinin güvenliği ve etkinliğinin değerlendirilmesi. Gürcü Med. Haberler. 2009 , 172–173 , 47–49. [ Google Scholar ]
          9. Arndt, KA Asiklovire ters reaksiyonlar: Topikal, oral ve intravenöz. J. Am. Acad. Dermatol. 1988 , 18 , 188–190. [ Google Akademik ] [ CrossRef ]
          10. Kang, SH; Chua-Gocheco, A .; Bozzo, P .; Einarson, A. Hamilelik sırasında herpes tedavisi için antiviral ilaçların güvenliği. Yapabilmek. Dostum. Phys. 2011 , 57 , 427–428. [ Google Scholar ]
          11. Pottage, JC, Jr .; Kessler, HA Herpes simpleks virüsünün asiklovire direnci: Klinik önemi. Infect. Ajanlar Dis. 1995 , 4 , 115–124. [ Google Scholar ] [ PubMed ]
          12. Jiang, YC; Feng, H .; Lin, YC; Guo, XR Herpes simpleks virüsüne karşı ilaç direncine karşı yeni stratejiler. Int. J. Oral Sci. 2016 , 8 , 1–6. [ Google Scholar ] [ CrossRef ] [ PubMed ] [ Yeşil Sürüm ]
          13. Weller, SK; Kuchta, RD Herpes viral enfeksiyonu için bir hedef olarak DNA helikaz-primaz kompleksi. Uzman Opin. Ther. Hedefler 2013 , 17 , 1119–1132. [ Google Scholar ] [ CrossRef ] [ PubMed ] [ Yeşil Sürüm ]
          14. Katsumata, K .; Weinberg, A .; Chono, K .; Takakura, S .; Kontani, T .; Suzuki, H. Genital herpes lezyonlarından izole edilen herpes simpleks virüsünün yeni bir sarmal primaz inhibitörü olan ASP2151'e duyarlılığı. Antimicrob. Agents Chemother. 2012 , 56 , 3587–3591. [ Google Akademik ] [ CrossRef ] [ PubMed ]
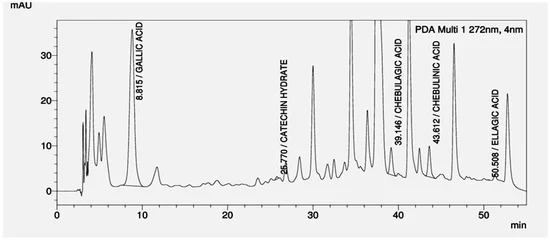
          15. Katsumata, K .; Chono, K .; Kato, K .; Ohtsu, Y .; Takakura, S .; Kontani, T .; Suzuki, H. Farmakokinetik ve farmakodinamik, bir sarmal primaz inhibitörü olan ASP2151'in, herpes simpleks virüs enfeksiyonunun bir murin modelinde. Antimicrob. Agents Chemother. 2013 , 57 , 1339–1346. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          16. Astellas, A. Faz 1, Sağlıklı Erkek ve Kadın Deneklerde ASP2151'in Güvenliğini Valacylcovir ve Plasebo ile Karşılaştırmak için Randomize, Çift Kör, Çoklu Dozlar, Çok Merkezli Çalışma. Çevrimiçi olarak mevcuttur: http://ichgcp.net/clinical-trials-registry/NCT00870441 (21 Ocak 2013'te erişildi).
          17. Zhong, MG; Xiang, YF; Qiu, XX; Liu, Z .; Kitazato, K .; Wang, YF Natural ürünleri, anti-herpes simpleks virüs ajanlarının bir kaynağı olarak. RSC Adv. 2013 , 3 , 313–328. [ Google Akademik ] [ CrossRef ]
          18. Galdiero, S .; Falanga, A .; Tarallo, R .; Russo, L .; Galdiero, E .; Cantisani, M .; Morelli, G .; Galdiero, herpes simpleks virüsü enfeksiyonlarına karşı M. Peptid inhibitörleri. J. Pept. Sci. 2013 , 19 , 148–158. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          19. Cheng, HY; Lin, TC; Yang, CM; Wang, KC; Lin, LT; Euphorbia jolkini'den Lin, CC Putranjivain A, in vitro herpes simplex virüs tip 2'nin hem virüs girişini hem de geç aşama replikasyonunu inhibe eder. J. Antimicrob. Chemother. 2004 , 53 , 577–583. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          20. De Oliveira, A .; Adams, SD; Lee, LH; Murray, SR; Hsu, SD; Hammond, JR; Dickinson, D .; Chen, P .; Chu, TC Herpes Simplex Virus tip 1'in modifiye edilmiş yeşil çay polifenol palmitoil-epigallo kateşin gallat ile inhibisyonu. Food Chem. Toxicol. 2013 , 52 , 207–215. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          21. Modi, M .; Dezzutti, CS; Kulshreshtha, S .; Rawat, AKS; Srivastava, SK; Malhotra, S .; Verma, A .; Ranga, U .; Gupta, SK Acacia catechu'dan elde edilen Ekstraktlar , viral proteaz ve Tat'ın aktivitelerini inhibe ederek HIV-1 replikasyonunu bastırır. Virol. J. 2013 , 10 , 309. [ Google Akademik ]
          22. Nutan, MM; Goel, T .; Das, T .; Malik, S .; Suri, S .; Rawat, AKS; Srivastava, SK; Tuli, R .; Malhotra, S .; Gupta, SK Ellagic asit ve Lagerstroemia speciosa L.'den gallik asit , HIV-1 proteaz ve ters transkriptaz aktivitesinin inhibisyonu yoluyla HIV-1 enfeksiyonunu inhibe eder. Indian J. Med. Res. 2013 , 137 , 540–548. [ Google Scholar ]
          23. Mao, X .; Wu, LF; Guo, HL; Chen, WJ; Cui, YP; Qi, Q .; Li, S .; Liang, WY; Yang, GH; Shao, YY; et al. Phyllanthus cinsi: Etnofarmakolojik, fitokimyasal ve farmakolojik bir inceleme. Kanıt. Tabanlı Tamamlayıcı. Alternatif. Med. 2016 , 2016 , 7584952. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          24. El-Mekkawy, S .; Meselhy, MR; Kusumoto, IT; Kadota, S .; Hattori, M .; Namba, T. Mısır halk ilaçlarının insan immün yetmezlik virüsü (HIV) ters transkriptaz üzerindeki inhibe edici etkileri. Chem. Ecz. Boğa. 1995 , 43 , 641–648. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          25. Kesharwani, A .; Polachira, SK; Nair, R .; Agarvval, A .; Mishra, NN; Gupta, Terminalia chebula Retz ekstresinin SK Anti-HSV-2 aktivitesi ve bileşenleri, chebulagic ve chebulinik asitler. BMC Tamamlayıcı Alternatif. Med. 2017 , 17 , 110. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          26. Alonso-Salces, RM; Korta, E .; Barranco, A .; Berrueta, LA; Gallo, B .; Vicente, F. Bask elması elma çeşitlerinin polifenolik profillerinin hızlandırılmış çözücü ekstraksiyonu kullanılarak belirlenmesi. J. Agric. Food Chem. 2001 , 49 , 3761–3767. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          27. Khan, AW; Kotta, S .; Ansari, SH; Sharma, RK; Kumar, A .; Ali, J. Yara iyileşmesi için aloe vera jelinin formülasyon gelişimi, optimizasyonu ve değerlendirilmesi. Pharmacognosy 2013 , 9 (Ek S1), S6 – S10. [ Google Scholar ]
          28. Armut, WS; Nolan, GP; Scott, ML; Baltimore, D. Geçici transfeksiyon ile yüksek titreli yardımcı içermeyen retrovirüslerin üretimi. Proc. Natl. Acad. Sci. USA 1993 , 90 , 8392–8396. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          29. Blaho, JA; Morton, ER; Yedowitz, JC Herpes simpleks virüsü: Yayılma ölçümü ve depolama. Curr. Protoc. Microbiol. 2005 . [ Google Akademik ] [ CrossRef ]
          30. Mosmann, T. Hücresel büyüme ve hayatta kalma için hızlı kolorimetrik tahlil: Çoğalma ve sitotoksisite tahlillerine uygulama. J. Immunol. Yöntemler. 1983 , 65 , 55–63. [ Google Akademik ] [ CrossRef ]
          31. Polonis, VR; Kahverengi, BK; Rosa Borges, A .; Zolla-Pazner, S .; Dimitrov, DS; Zhang, MY; Barnett, SW; Ruprecht, RM; Scarlatti, G .; Fenyö, EM; et al. Enfeksiyon ve aşılamaya karşı antikor yanıtının standartlaştırılmış değerlendirmesi için HIV-1 nötralizasyon tahlillerinin karakterizasyonunda son gelişmeler. Virology 2008 , 375 , 315–320. [ Google Scholar ] [ CrossRef ] [ PubMed ] [ Yeşil Sürüm ]
          32. Fenyo, EM; Heath, A .; Dispinseri, S .; Holmes, H .; Lusso, P .; Zolla-Pazner, S .; Donners, H .; Heyndrickx, L .; Alcami, J .; Bongertz, V .; et al. HIV nötralizasyon testinin karşılaştırılması için uluslararası ağ: NeutNet raporu. PLoS ONE 2009 , 4 , e4505. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          33. Shigeta, S .; Mori, S .; Baba, M .; Ito, M .; Honzumi, K .; Nakamura, K. ribavirin, 5-etinil-1-beta-D-ribofuranosylimidazol-4-karboksamid ve 6 ′ - (R) -6 ′ C metilneplanosin A'nın birkaç orto ve paramiksovirüslere karşı antiviral aktiviteleri. Antimicrob. Agents Chemother. 1992 , 36 , 435–439. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          34. Clancy, CJ; Nguyen, MH Mayaların standartlaştırılmış antifungal duyarlılık testi yöntemleriyle fotometrik bir yöntemin karşılaştırılması. J. Clin. Microbiol. 1997 , 35 , 2878–2882. [ Google Scholar ] [ PubMed ]
          35. Modi, M .; Pancholi, B .; Kulshrestha, S .; Rawat, AK; Malhotra, S .; Gupta, SK Anti-HIV-1 aktivitesi, proteaz inhibisyonu ve Rhus parviflora'dan hazırlanan ekstraktların güvenlik profili . BMC Tamamlayıcı. Alternatif. Med. 2013 , 13 , 158. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          36. Fichorova, RN; Rheinwald, JG; Anderson, Dokuya özgü farklılaşma proteinlerinin ifadesini koruyan normal insan ektoservikal, endoservikal ve vajinal epitelden papilloma virüsü ile ölümsüzleştirilmiş hücre hatlarının DJ Generation. Biol. Reprod. 1997 , 57 , 847–855. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          37. Mortelmans, K .; Zeiger, E. Ames Salmonella / mikrozom mutajenite deneyi. Mutat. Res. 2000 , 455 , 29–60. [ Google Akademik ] [ CrossRef ]
          38. Alexandre, KB; Mufhandu, HT; Londra, GM; Chakauya, E .; Khati, M. HIV-1 mikrop öldürücü gelişimi üzerine ilerleme ve perspektifler. Virology 2016 , 497 , 69–80. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          39. Fichorova, RN İnflamasyonun biyolojik belirteçleri ile vajinal mikrobisid denemelerine rehberlik ediyor. J. Acquir. Bağışıklık Eksikliği. Syndr. 2004 , 37 (Ek S3), S184 – S193. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          40. Cohen, MS Cinsel yolla bulaşan hastalıklar HIV geçişini artırır: Artık bir hipotez değil. Lancet 1998 , 351 , 5–7. [ Google Akademik ] [ CrossRef ]
          41. Corey, L .; Handsfield, HH Genital herpes ve halk sağlığı: Küresel bir sorunu ele almak. JAMA 2000 , 283 , 791–794. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          42. Bhabani, SN; Prasant, KR; Udaya, KN; Benoy, BB Vajinal kullanım için mikrokapsüllü metronidazolün biyo-yapışkan jelinin geliştirilmesi ve karakterizasyonu. İran. J. Pharm. Res. 2010 , 9 , 209–219. [ Google Scholar ]
          43. Zeitlin, L .; Hoen, TE; Aşil, SL; Hegarty, TA; Jerse, AE; Kreider, JW; Olmsted, SS; Whaley, KJ; Koni, RA; Hayvan modellerinde doğum kontrolü ve cinsel yolla bulaşan hastalıkların önlenmesi için Moench, TR BufferGel Testleri. Seks. Transm. Dis. 2001 , 28 , 417–423. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          44. Turakka, L .; Ojanen, T .; Henell, U .; Karjalainen, kremlerde antimikrobiyal koruyucu olarak A. Parabens. Pharmazie 1988 , 43 , 701–703. [ Google Scholar ] [ PubMed ]
          45. Fiume, MM; Heldreth, B .; Bergfeld, WF; Belsito, DV; Hill, RA; Klaassen, Kozmetikte kullanılan trietanolamin ve trietanolamin içeren bileşenlerin CD güvenlik değerlendirmesi. Int. J. Toxicol. 2013 , 32 (Ek S3), S59 – S83. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          46. Lessmann, H .; Uter, W .; Schnuch, A .; Geier, J. Etanolaminlerin mono-, di- ve trietanolaminin cilt hassaslaştırıcı özellikleri. Çok merkezli bir gözetim ağının (IVDK) veri analizi ve literatürün gözden geçirilmesi. Dermat ile iletişime geçin. 2009 , 60 , 243–255. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          47. Stout, El; McKessor, A. Enfeksiyon kontrolü için Gliserin bazlı hidrojel. Adv. Yara bakımı. 2012 , 1 , 48–51. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          48. Lodén, M .; Wessman, W.% 20 gliserin içeren bir kremin ve taşıyıcısının cilt bariyer özellikleri üzerindeki etkisi. Int. J. Cosmet. Sci. 2001 , 23 , 115–159. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          49. Di Lorenzo, C .; Dell'Agli, M .; Sangiovanni, E .; Dos Santos, A .; Uberti, F .; Moro, E .; Bosisio, E .; Restani, P. Yeşil ve siyah çay infüzyonları ile kateşin içeriği ve NF-κB inhibisyonu arasındaki ilişki. Bitki Gıdaları Hum. Nutr. 2013 , 68 , 149–154. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          50. Haneda, E .; Furuya, T .; Asai, S .; Morikawa, Y .; Ohtsuki, K. Kazein kinaz II'nin in vitro HIV-1 proteazın uyarılmasından sorumlu bir protein kinaz olarak biyokimyasal karakterizasyonu. Biochem. Biophys. Res. Commun. 2000 , 275 , 434–439. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          51. Kurapati, KR; Atluri, VS; Samikkannu, T .; Garcia, G .; Nair, MP Natural ürünleri anti-HIV ajanları ve HIV ile ilişkili nörobilişsel bozukluklarda (HAND) rolü: Kısa bir genel bakış. Ön. Microbiol. 2016 , 6 , 1444. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          52. Zhao, T .; Sun, Q .; Marques, M .; Witcher, Phyllanthus emblica'nın (Hint Bektaşi üzümü) M. Antikanser özellikleri . Oksit. Med. Hücre. Longev. 2015 , 2015 , 950890. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          53. Wang, CC; Yuan, JR; Wang, CF; Yang, N .; Chen, J .; Liu, D .; Song, J .; Feng, L .; Tan, XB; Jia, XB Phyllanthus emblica L'nin IL-1β / miR-101 / Lin28B sinyal yolunu düzenleyerek benzopirenin neden olduğu kanser öncesi akciğer lezyonu üzerindeki anti-inflamatuar etkileri . Integr. Cancer Ther. 2017 , 16 , 505–515. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          54. Xiang, Y .; Pei, Y .; Qu, C .; Lai, Z .; Ren, Z .; Yang, K .; Xiong, S .; Zhang, Y .; Yang, C .; Wang, D .; et al. Phyllanthus emblica L.'den (Euphorbiaceae) 1,2,4,6-tetra- O -galloyl-p- d -glukozun in vitro anti-herpes simpleks virüsü aktivitesi . Phytother. Res. 2011 , 25 , 975–982. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          55. Cheng, HY; Lin, CC; Lin, TC Antiherpes simpleks virüsü tip 2, Terminalia arjuna Linn kabuğundan casuarinin aktivitesi . Antiviral. Res. 2002 , 55 , 447–455. [ Google Akademik ] [ CrossRef ]
          56. Lin, LT; Chen, TY; Chung, CY; Noyce, RS; Grindley, TB; McCormick, C .; Lin, TC; Wang, GH; Lin, CC; Richardson, CD Hidrolize edilebilir tanenler (chebulagic asit ve punikalajin), herpes simpleks virüsü 1 girişini ve hücreden hücreye yayılmayı engellemek için viral glikoprotein-glikozaminoglikan etkileşimlerini hedefler. J. Virol. 2011 , 85 , 4386–4398. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          57. Lin, LT; Chen, TY; Chung, CY; Lin, TC; Wang, GH; Anderson, R .; Lin, CC; Richardson, CD Giriş için glikozaminoglikan kullanan virüslere karşı chebulagic asit ve punikalajinin geniş spektrumlu antiviral aktivitesi. BMC Microbiol. 2013 , 13 , 187. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          58. Vashishtha, AK; Kuchta, RD Asiklovir, Foscarnet ve ribonükleotidlerin herpes simpleks virüs-1 DNA polimeraz üzerindeki etkileri: Mekanistik içgörüler ve ribonükleotidlerin DNA'ya kararlı bir şekilde dahil edilmesini önlemek için yeni bir mekanizma. Biochemistry 2016 , 55 , 1168–1177. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          59. Gnann, JW, Jr.; Barton, NH; Whitley, RJ Acyclovir: Etki mekanizması, farmakokinetik, güvenlik ve klinik uygulamalar. Pharmacotherapy 1983 , 3 , 275–283. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          60. Dover, SE; Aroutcheva, AA; Faro, S .; Chikindas, ML Natural antimikrobiyaller ve vajinal sağlıktaki rolleri: Kısa bir inceleme. Int. J. Probiotics Prebiotics. 2008 , 3 , 219–230. [ Google Scholar ] [ PubMed ]
          61. Hervert-Hernández, D .; Pintado, C .; Rotger, R .; Goñi, I. Üzüm posası polifenollerinin Lactobacillus acidophilus büyümesi üzerindeki uyarıcı rolü . Int. J. Food Microbiol. 2009 , 136 , 119–122. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          62. Alberto, MR; Farías, ME; Manca De Nadra, MC Gallik asit ve kateşinin Lactobacillus hilgardii 5w büyümesi ve organik bileşiklerin metabolizması üzerindeki etkisi. J. Agric. Gıda. Chem. 2001 , 49 , 4359–4363. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          63. Stafford, MK; Ward, H .; Flanagan, A .; Rosenstein, IJ; Taylor-Robinson, D .; Smith, JR; Weber, J .; Kitchen, nonoxynol-9'un vajinal mikrobisid olarak VS Güvenlik çalışması: Yan etkilerin kanıtı. J. Acquir. Bağışıklık Eksikliği. Syndr. 1998 , 17 , 327–331. [ Google Akademik ] [ CrossRef ]
          64. Fichorova, RN; Zhou, F .; Ratnam, V .; Atanassova, V .; Jiang, S .; Strick, N .; Neurath, AR Anti-insan immün yetmezlik virüsü Tip 1 mikrobisid selüloz asetat 1,2-benzendikarboksilat, bir insan in vitro vajinal enflamasyon modelinde. Antimicrob. Agents Chemother. 2005 , 49 , 323–335. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          65. Poli, G .; Bressler, P .; Kinter, A .; Duh, E .; Zamanlayıcı, WC; Rabson, A .; Justement, JS; Stanley, S .; Fauci, AS Interleukin 6, tek başına enfekte monositik hücrelerde ve transkripsiyonel ve transkripsiyon sonrası mekanizmalarla tümör nekroz faktörü alfa ile sinerji içinde insan immün yetmezlik virüsü ekspresyonunu indükler. J. Exp. Med. 1990 , 172 , 151–158. [ Google Scholar ] [ CrossRef ] [ PubMed ] [ Yeşil Sürüm ]
          66. Narimatsu, R .; Wolday, D .; Patterson, BK IL-8, servikal eksplant dokusunda HIV tip 1'in bulaşmasını arttırır. AIDS Res. Hum. Retroviruses 2005 , 21 , 228–233. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          67. Burnett, BP; Jia, Q .; Zhao, Y .; Levy, RM Scutellaria baicalensis ve Acacia catechu'nun tıbbi bir özütü, iltihabı azaltmak için ikili bir siklooksijenaz ve 5-lipoksijenaz inhibitörü olarak işlev görür. J. Med. Gıda. 2007 , 10 , 442–451. [ Google Akademik ] [ CrossRef ] [ PubMed ]
          68. Halder, B .; Pramanick, S .; Mukhopadhyay, S .; Giri, AK Benzo [a] pirenin inhibisyonu, çoklu test sistemlerinde siyah çay polifenolleri, aflavinler ve arubiginler tarafından mutajenite ve genotoksisiteyi indükledi. Food Chem. Toxicol. 2005 , 43 , 591–597. [ Google Akademik ] [ CrossRef ] [ PubMed ]

          © 2018 yazarlar tarafından. Lisans Sahibi MDPI, Basel, İsviçre. Bu makale, Creative Commons Attribution (CC BY) lisansının (CC BY) hüküm ve koşulları altında dağıtılan bir açık erişimli makaledir.http://creativecommons.org/licenses/by/4.0/ ).
          Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
          Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

          Yorum yap


          • #6

            Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
            Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

            Yorum yap


            • #7
              SARS-CoV-2 proteinlerinin potansiyel çok hedefli inhibitörlerinin tanımlanması için Terminalia chebula'dan fitokimyasalların moleküler yerleştirme çalışmaları

              Arkaniva Sarkar , a Rushali Agarwal , b ve Boudhayan Bandyopadhyay c, ∗
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi İlişkili Veriler

              Ek Malzemeler
              Git: Soyut


              Şiddetli akut solunum sendromu koronavirüs 2'nin (SARS-CoV-2) neden olduğu COVID-19, dünya çapında 1,8 milyondan fazla ölümün yaşandığı küresel bir pandemi olarak ortaya çıkmış ve bugüne kadar %100 etkinliği kanıtlanmış hiçbir ilaç geliştirilmemiştir. Bu ölümcül hastalıkla mücadele etmek. Terminalia chebula'nın ( T. chebula ) antibakteriyel, antifungal, antiviral, antioksidan, antienflamatuar özelliklere sahip olduğu bilinmektedir. Bu çalışmada, T. chebula'dan on beş fitokimyasal üzerinde kör yerleştirme çalışmaları yaptık.SARS-CoV-2 proteinlerine karşı potansiyel adayı belirlemek. 1,3,6-Trigalloyl glikoz (-332.14 ± 55.74 kcal/mol), Beta-Sitosterol (-324.75 ± 36.98 kcal/mol) ve Daucosterol (-335.67) tanımlanan Atomik Temas Enerjisi (ACE) verilerinin analiziyle birleştirilmiş yerleştirme sonuçlarımız ± 104.79 kcal/mol) sekiz SARS-CoV-2 protein hedefinin tümüne karşı önemli ölçüde yüksek inhibisyon etkinliği sergileyen en umut verici adaylardır ve bu üçü COVID-19'un tedavisinde ve önlenmesinde potansiyel çok hedefli ilaç olarak kullanılabilir. Çalışmamızın, kapsamlı ıslak laboratuvar analizi desteğiyle gelecekte ölümcül patojen SARS-COV-2 ile mücadele etmek için T. chebula'dan çok hedefli ilacı geliştirmelerine bilimsel topluluklara yardımcı olma potansiyeline sahip olduğuna inanıyoruz .

              Anahtar Kelimeler: SARS-CoV-2, fitokimyasal, moleküler yerleştirme, çok hedefli ilaç
              Kısaltmalar: ACE, Atomik Temas Enerjisi (kcal/mol); ADME/T, Emilim, Dağılım, Metabolizma, Boşaltım ve Toksisite; NSP, Yapısal Olmayan Protein; PDB, Protein Veri Bankası; T. chebula, Terminalia chebula
              Git: Tanıtım


              Küresel salgın COVID-19 salgını, bilimsel ve tıbbi toplulukların her türlü çabasına rağmen bir yıl içinde dünya çapında 1,8 milyondan fazla ölüme neden olduğu için etkili ilaç ve aşıların tasarlanmasını ve geliştirilmesini gerektirmektedir ( WHO, 2021 ). Bazı aşılar faz 3 denemelerinde olmasına ve ayrıca aşılama dünya çapında yeni başlamış olmasına rağmen ( WHO, 2020 ), bugüne kadar COVID-19'un tedavisi ve önlenmesi için spesifik bir anti-viral ilaç geliştirilmemiştir.

              Çalışmamızda, bitkilerden elde edilen tamamen doğal olduğu için “Ayurveda tıbbı” olarak bilinen Hint geleneksel bitkisel tıbbına odaklanılmıştır. Antik Vedik çağda ayurveda tıbbı ateş, grip, öksürük ve soğuk algınlığı tedavisinde düzenli olarak kullanılmıştır ( Vaidya & Sawarkar, 2020 ). Tüm ayurvedik ilaçlar arasında , çok çeşitli hastalıkların tedavisinde yüksek terapötik faydalara sahip olduğu bilindiği için temel olarak Terminalia chebula'ya odaklandık . Aynı zamanda , çok çeşitli geleneksel ilaçlardaki etkinliği ve çeşitli hastalıkları iyileştirmesi nedeniyle “İlaçların Kralı ” olarak kabul edildi ( Ratha ve Joshi, 2013 ). T. chebula esas olarak Güney Asya ülkelerinde bulunur ve Terminalia'ya aittir.dünyanın tropik bölgesinde yayılış gösteren 250 türü bulunan bir cins ( Riaz, Khan, Sherkheli, Khan, & Rashid, 2017 ). T. chebula'dan ekstrakte edilen bazı bileşiklerin anti-bakteriyel ve anti-viral aktivite sergilediği bildirilmektedir ( Lee, Boo ve Woo, 2011 ; Rathinamoorthy ve Thilagavathi, 2014 ). Yakın tarihli bir çalışmada, Upadhyay ve ark. potansiyel terapötik şifalı bitkiyi belirlemek için ana proteazını hedefleyen 51 şifalı bitkinin SARS-CoV-2'ye karşı taranmasını gerçekleştirdi ve Tea ( C. sinensis ) ve Haritaki'nin ( T. chebula ), SARS-'ın 3CL pro proteazına karşı önemli inhibitör aktivite sergilediğini buldu. CoV-2 (Upadhyay ve diğerleri, 2020 ). Bu bulgu , COVID-19'un tedavisi ve önlenmesi için potansiyel ilacı belirlemek için T. chebula'dan gelen fitokimyasalların in silico taramasını gerçekleştirmemize yol açtı .

              T. chebula'da çeşitli flavonoidler, flavinler, terpenoidler, tanenler, steroidler, fenoller içeren çok çeşitli doğal ürünler bulunur ( Riaz ve diğerleri, 2017 ). Bu çalışmada, flavonoidler, flavinler, terpenoidler, steroid ailelerinden on beş fitokimyasal molekül seçtik (tablo 1 ) tarama amacımız için ve seçilen fitokimyasallar ile önemli işlevlere sahip SARS-COV-2 hedef proteinlerinin rapor edilen kristal yapıları arasında kör yerleştirme gerçekleştirdi. Hedef proteinler arasında nükleokapsid protein N-terminal RNA bağlama alanı ( Kang ve diğerleri, 2020 ), NSP15 Endoribonükleaz ( Kim ve diğerleri, 2020 ), Nsp9 RNA bağlayıcı protein ( Sutton ve diğerleri, 2004 ), Papain benzeri proteaz ( Kang ve diğerleri, 2020) bulunur. Shin ve diğerleri, 2020 ), Yapısal olmayan protein 10 (NSP10) ( Rogstam ve diğerleri, 2020 ), NSP13 helikaz ( White, Lin ve Cheng, 2020 ), ana proteaz ( Jin ve diğerleri, 2020 ) ve RNA'ya bağımlı RNA polimeraz (RdRp) ( Gao ve diğerleri, 2020). On beş fitokimyasalın tümü için yerleştirme çalışması yoluyla potansiyel inhibitör aktiviteyi analiz ettik ve 1,3,6-Trigalloyl glukoz, Beta-Sitosterol ve Daucosterol'ün sekiz SARS-CoV-2 proteininin tümüne karşı en umut verici inhibitör etkiye sahip olduğunu bulduk. Arjunetin, Arjungenin, Arjunik asit ve Arjunolik asidin de en az altı proteine ​​karşı etkili olduğu bulundu. Bu sonuç, bu fitokimyasalların çeşitli SARS-CoV-2 proteinlerine karşı potansiyel çok hedefli inhibitörler olarak kullanılabileceğini, ancak bu sonucu doğrulamak için klinik deneylerin yapılması gerektiğini gösterdi. tablo 1


              Bu çalışmada kullanılan T. chebula'dan elde edilen fitokimyasalların listesi .
              1,3,6-Trigalloil glikoz C 27 H 24 O 18 636.47 Gallotanin
              arjuetin C 36 H 58 O 10 650.84 triterpenoid
              Arjungenin C 30 H 48 O 6 504.7 triterpenoid
              arjunik asit C 30 H 48 O 5 488.7 triterpenoid
              arjunolik asit C 30 H 48 O 5 488.7 triterpenoid
              Beta-Sitosterol C29H50O _ _ _ _ 414.71 fitosterol
              şebulik asit C14H12O11 _ _ _ _ _ 356.24 ellagitannin
              daukosterol C 35 H 60 O 6 576.85 fitosterol
              ellagik asit C14H6O8 _ _ _ _ _ 302.19 Tanen
              izokersitrin C21H20O12 _ _ _ _ _ 464.38 flavonoid
              isorhamnetin C 16 H 12 O 7 316.26 flavonoid
              lüteolin C 15 H 10 O 6 286.24 flavonoid
              kuersetin C 15 H 10 O 7 302.24 flavonoid
              Rutin C 27 H 30 O 16 610.52 flavonoid
              terminolik asit C 30 H 48 O 6 504.7 triterpenoid
              Ayrı bir pencerede aç
              Git: Malzemeler ve yöntemler

              Ligand ve reseptör


              Proteinlerin 3D yapısı - nükleokapsid protein N-terminal RNA bağlama alanı (PDB: 6M3M), RNA'ya bağımlı RNA polimeraz (PDB: 6M71), NSP15 Endoribonükleaz (PDB: 6VWW), Nsp9 RNA bağlama proteini (PDB: 6W4B), SARS-CoV-2'nin papain benzeri proteazı (PDB: 6WUU), Yapısal olmayan protein 10 (PDB: 6ZCT), helikaz (PDB: 6ZSL) ve ana proteazı (PDB: 7COM) Protein Veri Bankasından ( https:/ /www.rcsb.org/ ). PDB dosyaları, varsa su molekülleri ve hetero atomları çıkarılarak temizlendi.

              T. chebula'dan ekstrakte edilebilen on beş fitokimyasaldan oluşan bir kütüphane yapılmıştır. Ligandlar 1,3,6-Tri-O-galloil-beta-D-glukoz (PubChem: 452707), Arjunetin (PubChem: 21152828), Arjungenin (PubChem: 12444386), Arjunik asit (PubChem: 15385516), Arjunolik asit ( PubChem: 73641), Askorbik asit (PubChem: 5785), Beta-sitosterol (PubChem: 222284), Chebulik asit (PubChem: 25255065), Daucosterol (PubChem: 5742590), Ellagic asit (PubChem: 5281855), Isoquercitrin (PubChem: 5280804) ), Isorhamnetin (PubChem: 5281654), Luteolin (PubChem: 5280445), Quercetin (PubChem: 5280343), Rutin (PubChem: 5280805) ve Terminolik asit (PubChem: 12314613) NCBI PubChem veri tabanından ( https://pubchem. ncbi.nlm.nih.gov/) ve sınıfa göre kategorize edilmiştir. Ligandlar, openbabel yazılımı ( http://openbabel.org ) kullanılarak PDB dosya formatına dönüştürüldü . Protein kalitesinin doğrulanması


              Proteinlerin üç boyutlu yapılarının kalitesi Prosa ( https://prosa.services.came.sbg.ac.at/prosa.php ) ve Procheck ( https://servicesn.mbi.ucla.edu ) kullanılarak doğrulanmıştır. /PROCHECK/ ) sunucusu. Z-skoru ve tercih edilen bölgelerdeki ve aykırı değerlerdeki kalıntı yüzdesi, her protein için not edildi. Bağlama cebi tahmini


              Potansiyel ilaç bağlama cepleri, ceplerin hacim ve yüzey hacim oranı, her cepte bulunan ilaç Skoru ve kalıntıların detayları DOGSiteScorer sunucusu ( https://proteins.plus/ ) kullanılarak belirlenir. Bağlama ceplerinin geometrik ve fizikokimyasal özellikleri analiz edilir ve bir destek vektör makinesi (SVM) yardımıyla ilaç verilebilirlik tahmin edilir. İlk üç bağlama cebi, uyuşturucu puanlarına göre seçilir. Kör Moleküler yerleştirme


              Olası etkileşimleri bulmak için 15 ligand seti ile moleküler yerleştirme yapıldı. Yama yuvası web sunucusu ( https://bioinfo3d.cs.tau.ac.il/PatchDock/Moleküler yerleştirmenin şekil tamamlayıcılık yaklaşımı temelinde çalışan ), yerleştirme çalıştırmalarını gerçekleştirmek için kullanıldı. Tüm etkileşimlerin tamamen tarafsız olmasını sağlamak için, hedef proteinlerde herhangi bir esnekliğin olmayacağı ve bağlanma cebinin tanımlanmayacağı tüm yerleştirme etkileşimleri boyunca kör yaklaşımı seçtik. Proteinlerin ve ligandların PDB dosyaları sırasıyla reseptör molekülü ve ligand molekülü yerine yüklendi. Kümeleme RMSD'si 4.0'a ayarlandı ve kompleks tip, protein-küçük ligand olarak verildi. Puanları, atomik temas enerjisi (ACE) ve dönüşüm verileriyle birlikte her protein için en iyi 100 yerleşik kompleks kaydedildi. Discovery studio görselleştiricisi, olası protein-ligand etkileşimlerinin varlığını analiz etmek için kullanıldı. ADME/T analizi


              Büyük küçük moleküllerin farmakokinetik özellikleri SwissADME sunucusu ( http://www.swissadme.ch/ ) yardımıyla tahmin edildi ve farmakodinamik özellikleri admetSAR sunucusu ( http://lmmd.ecust.edu.cn/admetsar1/ ) kullanılarak tahmin edildi. tahmin / ). Farmakokinetik özellikler, Lipinski'nin beş kuralı kullanılarak değerlendirildi. Lipinski kuralına uyan moleküller ideal ilaç adayları olarak kabul edilebilir. Absorpsiyon, dağılım, metabolizma, atılım, toksisite, çözünürlük (LogS), insan bağırsak absorpsiyonu (HIA), CaCO-2 geçirgenliği, P-glikoprotein substrat inhibisyonu, sitokrom substrat/inhibitörü, AMES toksisitesi ve akut sıçan toksisitesini (LD50) tanımlayan parametreler aşağıdaki gibidir: farmakodinamik çalışmada kontrol edilmiştir ( Bhowmik ve diğerleri, 2020 ).

              Git: Sonuçlar

              Fitokimyasallar ve hedef proteinler kütüphanesinin oluşturulması


              Literatür araştırması kullanılarak T. chebula'nın on beş fitokimyasalından oluşan bir kütüphane oluşturulmuştur ( Chang & Lin, 2012 ; Riaz ve diğerleri, 2017 ) (tablo 1). 3B yapıları NCBI PubChem veri tabanından alındı ​​ve fonksiyonel gruplarına göre kategorize edildi. Hem farmakokinetiği tahmin etmek için ADME/T analizi yapıldı (Tablo 5.1) ve farmakodinamik özellikler (Tablo 5.2). SARS-CoV-2'nin sekiz proteini biyolojik işlevlerine göre seçildi. Bu proteinlerin kristal yapıları Protein Veri Bankasından alınmıştır (Tablo 2 ) ve her PDB dosyası için yapısal bütünlük kontrol edildi (Tablo 3 ). Z-skorları ve her bir protein için tercih edilen bölgedeki kalıntı yüzdesi, bunların yapısal olarak daha ileri siliko analizi için iyi olduğunu göstermektedir. Her protein yapısı için bağlanma cebi, DOGSiteScorer sunucusunun yardımıyla tahmin edildi ve yerleştirme bölgelerindeki etkileşimli kalıntıların analizi ve karşılaştırılması için ilk üç ana bağlanma cebi seçildi (Tablo 4 ). Tablo 2


              PDB ID, zincir ID ve zincir uzunluklarıyla birlikte SARS-CoV-2 hedef proteinlerinin listesi.
              Nükleokapsid protein N-terminal RNA bağlama alanı 6M3M A,B,C,D 136
              NSP15 Endoribonükleaz 6VWW A, B 370
              Nsp9 RNA bağlayıcı protein 6W4B A, B 117
              Papain benzeri proteaz 6WUU A,B,C,D 326
              Yapısal olmayan protein 10 (nsp10) 6ZCT A 125
              sarmal 6ZSL A, B 603
              Ana proteaz 7COM A, B 306
              SARS-Cov-2 RNA'ya bağımlı RNA polimeraz 6M71 A 942
              Ayrı bir pencerede aç Tablo 3


              SARS-CoV-2'nin hedef proteinlerinin PDB dosyalarının kalitesinin değerlendirilmesi.
              6M3M -5.06 96.48 0,00
              6VWW -7.94 97.83 0,00
              6W4B -4.25 94.12 0,00
              6WUU -8.77 95.34 0.08
              6ZCT -3.73 94.31 0,00
              6ZSL -8,52 96.15 0.17
              7COM -7.36 98.15 0,00
              6M71 -12.25 95.77 0,00
              Ayrı bir pencerede aç Tablo 4


              SARS-CoV-2'nin hedef proteinlerinin kristal yapıları için bağlanma cebi tahmini.
              6M3M P1 277.12 365.39 0.26 0.35 0,59
              P0 312.9 707.83 0.22 0.32 0,57
              P2 235.33 354.95 0.27 0.28 0.48
              6VWW P0 680.02 756,69 0.08 0.25 0.85
              P3 263.92 297,8 0.11 0.34 0.74
              P1 411.21 666.35 0.14 0,56 0.68
              6W4B P1 564.35 818.37 0.16 0.42 0.78
              P0 577.92 1014.28 0.22 0,55 0.77
              6WUU P1 677.38 879.85 0.09 0.25 0.85
              P0 783.1 1023.19 0.14 0.45 0,83
              P3 283.71 386.14 0 0.12 0.68
              6ZCT P0 392.06 409.3 0.18 0.45 0.64
              P1 176.9 284.4 0.11 0.33 0,41
              P4 106.56 319.45 0.16 0.81 0.25
              6ZSL P1 684.82 827.54 0.12 0.36 0.85
              P2 613.86 801.63 0.19 0.46 0.81
              P0 686.74 754.76 0.11 0.29 0,8
              7COM P0 1043.78 1408.64 0.15 0,52 0.81
              P1 574.91 697,21 0.19 0,41 0.74
              P2 297,6 558,95 0.26 0,53 0,58
              6M71 P2 513.04 633.32 0 0.09 0.88
              P1 526.05 651.08 0.02 0.18 0.86
              P6 406.14 664.96 0.14 0.22 0.81
              Ayrı bir pencerede aç Tablo 5


              ADME/T Bu çalışmada kullanılan fitokimyasalların özellikleri.
              1,3,6-Trigalloil glikoz Molekül ağırlığı (g/mol) 636.47 310.66 1.82 Çözünür
              lipofilisite 0.36
              Hidrojen Bağ Donörleri 11
              Hidrojen Bağ Alıcıları 18
              Molar Kırılma 142.86
              Lipinski'nin İhlalleri 3
              arjuetin Molekül ağırlığı (g/mol) 650.84 177.14 47.88 Orta Derecede Çözünür
              lipofilisite 3.36
              Hidrojen Bağ Donörleri 7
              Hidrojen Bağ Alıcıları 10
              Molar Kırılma 170.95
              Lipinski'nin İhlalleri 2
              Arjungenin Molekül ağırlığı (g/mol) 504.7 118.22 68.21 Orta Derecede Çözünür
              lipofilisite 4.5
              Hidrojen Bağ Donörleri 5
              Hidrojen Bağ Alıcıları 6
              Molar Kırılma 140.14
              Lipinski'nin İhlalleri 1
              Arjunik Asit Molekül ağırlığı (g/mol) 488.7 97.99 75.19 Zayıf Çözünür
              lipofilisite 5.17
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 5
              Molar Kırılma 138.98
              Lipinski'nin İhlalleri 0
              Arjunolik Asit Molekül ağırlığı (g/mol) 488.7 97.99 75.19 Zayıf Çözünür
              lipofilisite 5.84
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 5
              Molar Kırılma 138.98
              Lipinski'nin İhlalleri 0
              Beta-Sitosterol Molekül ağırlığı (g/mol) 414.71 20.23 102.02 Zayıf Çözünür
              lipofilisite 9.34
              Hidrojen Bağ Donörleri 1
              Hidrojen Bağ Alıcıları 1
              Molar Kırılma 133.23
              Lipinski'nin İhlalleri 1
              şebulik asit Molekül ağırlığı (g/mol) 356.24 198.89 40.38 Çok Çözünür
              lipofilisite -0.81
              Hidrojen Bağ Donörleri 6
              Hidrojen Bağ Alıcıları 11
              Molar Kırılma 75.99
              Lipinski'nin İhlalleri 2
              daukosterol Molekül ağırlığı (g/mol) 576.85 99.38 74.71 Zayıf Çözünür
              lipofilisite 7.74
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 6
              Molar Kırılma 165.61
              Lipinski'nin İhlalleri 1
              ellagik asit Molekül ağırlığı (g/mol) 302.19 141.34 60.23 Çözünür
              lipofilisite 1.1
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 8
              Molar Kırılma 75.31
              Lipinski'nin İhlalleri 0
              izokersitrin Molekül ağırlığı (g/mol) 464.38 210.51 36.37 Çözünür
              lipofilisite 0.36
              Hidrojen Bağ Donörleri 8
              Hidrojen Bağ Alıcıları 12
              Molar Kırılma 110.16
              Lipinski'nin İhlalleri 2
              isorhamnnetin Molekül ağırlığı (g/mol) 316.26 120.36 67.47 Çözünür
              lipofilisite 1.87
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 7
              Molar Kırılma 82.5
              Lipinski'nin İhlalleri 0
              lüteolin Molekül ağırlığı (g/mol) 286.24 111.13 70.66 Çözünür
              lipofilisite 2.53
              Hidrojen Bağ Donörleri 4
              Hidrojen Bağ Alıcıları 6
              Molar Kırılma 76.01
              Lipinski'nin İhlalleri 0
              kuersetin Molekül ağırlığı (g/mol) 302.24 131.36 63.68 Çözünür
              lipofilisite 1.54
              Hidrojen Bağ Donörleri 5
              Hidrojen Bağ Alıcıları 7
              Molar Kırılma 78.03
              Lipinski'nin İhlalleri 0
              Rutin Molekül ağırlığı (g/mol) 610.52 269.43 16.04 Çözünür
              lipofilisite -0.33
              Hidrojen Bağ Donörleri 10
              Hidrojen Bağ Alıcıları 16
              Molar Kırılma 141.38
              Lipinski'nin İhlalleri 3
              terminolik asit Molekül ağırlığı (g/mol) 504.7 118.22 68.21 Orta Derecede Çözünür
              lipofilisite 4.5
              Hidrojen Bağ Donörleri 5
              Hidrojen Bağ Alıcıları 6
              Molar Kırılma 140.14
              Lipinski'nin İhlalleri 1
              Ayrı bir pencerede aç
              1,3,6-Trigalloil glikoz BBB+ HİA- Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.6316 zayıf inhibitör
              arjuetin BBB+ SED+ Caco2- Yüzey/İnhibitör olmayan Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.8073 zayıf inhibitör
              Arjungenin BBB+ SED+ Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.1598 zayıf inhibitör
              arjunik asit BBB+ SED+ Caco2+ Yüzey/İnhibitör olmayan Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.1021 zayıf inhibitör
              arjunolik asit BBB+ SED+ Caco2- Yüzey/İnhibitör olmayan Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.1598 zayıf inhibitör
              Beta-Sitosterol BBB+ SED+ Caco2+ Substrat/İnhibitör Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan i 2.6561 zayıf inhibitör
              şebulik asit BBB- SED+ Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik olmayan kanserojen olmayan IV 2.6663 zayıf inhibitör
              daukosterol BBB+ SED+ Caco2- Substrat/İnhibitör Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.9113 zayıf inhibitör
              ellagik asit BBB+ SED+ Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik olmayan kanserojen olmayan II 2.6213 zayıf inhibitör
              izokersitrin BBB- SED+ Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik kanserojen olmayan III 2.3869 zayıf inhibitör
              isorhamnetin BBB- SED+ Caco2+ Yüzey/İnhibitör olmayan Substrat/inhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.7192 zayıf inhibitör
              lüteolin BBB- SED+ Caco2- Yüzey/İnhibitör olmayan Substrat/inhibitör olmayan AMES toksik olmayan kanserojen olmayan II 3.02 zayıf inhibitör
              kuersetin BBB- SED+ Caco2- Yüzey/İnhibitör olmayan Substrat/inhibitör olmayan AMES toksik olmayan kanserojen olmayan II 3.02 zayıf inhibitör
              Rutin BBB- SED+ Caco2- Yüzey/İnhibitör olmayan Substrat olmayan/inhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.4984 zayıf inhibitör
              terminolik asit BBB+ SED+ Caco2- Yüzey/İnhibitör olmayan Yüzey/İnhibitör olmayan AMES toksik olmayan kanserojen olmayan III 2.1598 zayıf inhibitör
              Ayrı bir pencerede aç
              Her protein, on beş ligandın kitaplığına karşı kör bir şekilde kenetlendi ve her protein için kenetlenme puanı ve atomik temas enerjisi (ACE) verileriyle birlikte ilk 100 kenetlenmiş kompleks üretildi. En iyi yerleştirme pozu, yerleştirme puanı, uygun ACE ve moleküller arası etkileşime göre seçildi. Her protein hedefi ve ligandlar arasındaki moleküler etkileşimlerin detayları aşağıda tartışılmaktadır. İlaç hedefi olarak Nükleokapsid proteininin N-terminal RNA bağlama alanı


              Nükleokapsid proteini, viral RNA'nın transkripsiyonu ve translasyonunda çok önemli bir rol oynar. Viral birleşim sırasında ribonükleoproteinlerin oluşumuna yardımcı olur, viral RNA sentezine yardımcı olur ve konakçı hücre yanıtlarını etkiler ( Kang ve diğerleri, 2020 ). Bu proteinin N-terminal RNA bağlama alanı, diğer RNA bağlama proteinlerininkine kıyasla yapısal olarak farklıdır. RNA bağlanmasında rol oynayan Nükleokapsid proteininin N-terminal RNA bağlanma alanının kalıntıları Leu56, Gly60, Lys61, Lys65, Phe66, Ala90, Arg93, Ile94, Arg95, Lys102, Asp103, Leu104, Thr165, Thr166, Gly175 ve Arg177'dir ( ve diğerleri, 2020). Bu N-terminal RNA bağlanma alanının (PDB ID: 6M3M) kristal yapısını kullanan yerleştirme çalışmamız, Beta-Sitosterol ve 1,3,6-Trigalloyl glukozun, ACE verilerinden açıkça görüldüğü üzere en umut verici inhibisyon özelliğini gösterdiğini göstermiştir, yani -326.98 sırasıyla kcal/mol ve -325.98 kcal/mol ( Ek Tablo 1 ). Beta-Sitosterol esas olarak hidrofobik kalıntıların alkil grupları (Leu168, Leu162, Val159) ile etkileşime girerken, 1,3,6-Trigalloil glikoz hem hidrojen bağı (H-bağ) (Gly138, Ala139, Asn141) hem de hidrofobik kalıntıların alkil grupları ile etkileşime girer. 2D etkileşim grafiğinde gösterildiği gibi proteinin kalıntıları (Pro68, Arg69, Ala135, Ile85, Ala139).1 F ve 1A, Ek Tablo 1 ). Pro68, Arg69, Ala135, N-terminal RNA bağlama alanında tahmin edilen bağlama cebinin bir parçasıdır. Daucosterol ayrıca 6M3M ile enerjetik olarak uygun etkileşim sergilemesine rağmen, yerleştirme pozunda ligand ve protein arasında H bağı, alkil hidrofobik etkileşim gibi hiçbir olumlu etkileşim gözlenmedi. 1,3,6-Trigalloyl glukoz ve beta-Sitosterol dışında; Arjunolik asit, Ellagik asit, Luteolin ve Rutin, ACE (<-200 kcal/mol) ve 6M3M ile uygun H-bağ ve alkil etkileşimleri açısından orta düzeyde inhibitör özellikler gösterir. Tüm bu moleküller, bu moleküllerin bu proteinin RNA bağlama aktivitesini rekabetçi bir şekilde engelleyebileceğini gösteren RNA bağlama kalıntılarının yakınında bağlanır.


              6M3M (Nükleokapsid proteininin N-terminal RNA bağlama alanı) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloil glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E Arjunolik asit, F. Beta-sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak NSP15 Endoribonükleaz


              NSP15, konağın doğuştan gelen bağışıklık tepkisi ile protein etkileşiminden sorumludur. Ayrıca viral RNA'yı konakçı immün yanıtlarından gizlemek için parçalaması da önerilmektedir ( Kim ve diğerleri, 2020 ). On beş fitokimyasalın in silico taraması, NSP15 Endoribonükleazın (PDB ID: 6VWW) kristal yapısına karşı yapıldı. Yerleştirme sonuçları, Beta-Sitosterol, 1,3,6-Trigalloyl glukoz, Daucosterol ve Arjunolik asidin, ACE verilerinden de anlaşılacağı gibi, 15 ligand arasında önemli ölçüde daha yüksek inhibisyon özelliği gösterdiğini gösterdi, yani -343.98, -339.28, -332.89 ve -327.48 kcal/ sırasıyla mol ( Ek Tablo 2). Beta-Sitosterol (Ile80, Ile97, Leu50, Ala93) ve Arjunolik asit (Ala93, Leu50, Pro94, Ile97), 2D etkileşim grafiğinde gösterildiği gibi esas olarak 6VWW'nin hidrofobik kalıntılarının alkil gruplarıyla etkileşime girer (İncir. 2 F ve 2E, Ek Tablo 2 ), 1,3,6-Trigalloyl glikoz ve Daucosterol, H-bağlama ve alkil hidrofobik etkileşimler yoluyla etkileşime girer (İncir. 2A ve 2H, Ek Tablo 2 ). 1,3,6-Trigalloyl glukoz olması durumunda, proteinin Ser98, Pro94, Pro271, Thr48, Thr49 kalıntıları H bağına, Ile97, Ala93, Arg91, Leu50 kalıntıları ise hidrofobik etkileşime katılır (İncir. 2A, Ek Tablo 2 ). Daucosterol söz konusu olduğunda, esas olarak proteinin His96, Ile97, Pro94, Ala93, Leu50 kalıntıları ile gerçekleşen hidrofobik etkileşimdir (İncir. 2H, Ek Tablo 2 ). Arjunetin (-294,42 kcal/mol), Arjungenin (-297,74 kcal/mol), Arjunik asit (-281,34 kcal/mol), Isorhamnetin (-213,7 kcal/mol) ve Luteolin (-244,27 kcal/mol) ayrıca orta düzeyde inhibisyon etkinliği sergiler. yukarıda belirtilen ilk dört inhibitör dışında ( Ek Tablo 2 ). Tüm bu moleküllerin, heksamer oluşumundan ve trimer stabilitesinden sorumlu olan NSP15'in orta alanına bağlandığı gözlemlenmiştir ( Joseph ve diğerleri, 2007 ; Xu ve diğerleri, 2006 ).


              6VWW (NSP15 Endoribonükleaz) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloyl glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F. Beta -sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak Nsp9 RNA bağlayıcı protein


              NSP9, viral RNA sentezinde yer alır ve viral replikasyona aracılık eder ( Sutton ve diğerleri, 2004 ). RNA bağlanma mekanizması net olarak bilinmemekle birlikte, SARS-CoV-2'nin virülansı için önemlidir. Yerleştirme çalışmamız için NSP9'un kristal yapısı (PDB ID: 6W4B) kullanıldı. Yerleştirme sonuçları, Arjunetin (-464.74 kcal/mol) ve Daucosterol'ün (-409.83 kcal/mol) son derece uygun ACE verilerinden açıkça görüldüğü üzere, sırasıyla -464.74 ve -409.83 kcal/mol gibi ilk iki inhibitör olduğunu göstermektedir. Bu iki ligand, esas olarak Nsp9'un hidrofobik kalıntılarının (tahmin edilen bağlama cebinde yer alan) alkil gruplarıyla ve ('de gösterildiği gibi H-bağıyla etkileşime girer.Şekil 3 B ve 3H) ve Ek Tablo 3 . Bu durumda, ortalama olarak, Luteolin (-181.15 kcal/mol) dışındaki tüm ligandlar, uygun ACE (<- 200 kcal/mol) ile Nsp9 ile etkileşime girer. Çoğu durumda, etkileşim, 2B etkileşim grafiğinde gösterildiği gibi, öncelikle alkil hidrofobik etkileşim ve daha az sayıda H bağı ile gerçekleşti (Şekil 3) ve Ek Tablo 3 . Bu durumda, tüm bu moleküller, dimerizasyonundan sorumlu olan GxxxG motifinden (Gly101, Met102, Val103, Leu104, Gly105) ayrı olarak bir 11.92 ±3.3 Â bölgesine bağlanır ( Littler, Gully, Colson ve Rossjohn, 2020 ). Bu etkileşim türü, NSP9 aktivitesine karşı olası rekabetçi olmayan inhibisyonun göstergesidir.


              6W4B (Yapısal olmayan protein 9: Nsp9) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloyl glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F. Beta-sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak papain benzeri proteaz


              Papain benzeri proteaz, viral poliproteinlerin işlenmesinden ve viral replikasyondan sorumludur. Ayrıca SARS-CoV-2 viral yayılımını ve doğuştan gelen bağışıklığı düzenlediği bilinmektedir ( Shin ve diğerleri, 2020 ). Papain benzeri proteazın kristal yapısı (PDB ID: 6WUU), on beş fitokimyasala karşı yerleştirme için kullanıldı ( Ek Tablo 4 ). Sonuçlar, Daucosterol'ün, enerji açısından oldukça elverişli etkileşiminden (ACE: -520.75 kcal/mol) da anlaşılacağı gibi Papain benzeri proteaza karşı en iyi aday olduğunu göstermektedir. Esas olarak, 6WUU'nun (Cys112–His273–Asp287'den oluşan katalitik üçlü) aktif bölgesinde bulunan hidrofobik kalıntılarla (Cys111, Leu162, Cys270, Tyr264, Tyr268) etkileşime girer ( Baez-Santos, St John ve Mesecar, 2015), 2B etkileşim grafiğinde görüldüğü gibi (4 H) ve Ek Tablo 4 . Beta-Sitosterol ayrıca proteinin Ile314, Val188, Tyr233 kalıntıları ve düşük ACE (-363.05 kcal/mol) ile hidrofobik etkileşimler yoluyla önemli ölçüde olumlu bağlanma sergiler (4F ve Ek Tablo 4 ), etkileşim, protein fonksiyonuna karşı olası rekabetçi olmayan inhibisyonu düşündüren katalitik üçlüden çok uzak olmasına rağmen. Bu iki fitokimyasalın dışında, 1,3,6-Trigalloyl glukoz, yüksek sayıda H bağı (Glu214, Lys217, Tyr233, Ile314, Thr311) ve hidrofobik etkileşim (ACE: -260.13 kcal/mol) ile 6WUU (ACE: -260.13 kcal/mol) ile orta derecede yüksek etkileşim gösterir. Thr313, Thr312, Asn186, Val188, Tyr233, Lys217) (4A ve Ek Tablo 4 ). Beta-Sitosterol'e benzer şekilde, bu durumda inhibisyon, rekabetçi olmayan bir şekilde gerçekleşiyor gibi görünmektedir. Isorhamnetin (-255.64 kcal/mol) ve Quercetin (-256.38 kcal/mol), esas olarak hidrofobik etkileşim yoluyla orta derecede inhibisyon özelliği sergiler (4K ve 4M ve Ek Tablo 4 ) protein ile. Isorhamnetin, 6WUU'nun katalitik bölgesinde rekabet ederken, Quercetin rekabetçi olmayan bir şekilde etkileşime girer.


              6WUU (Papain-benzeri proteaz) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloil glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F Beta-sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak yapısal olmayan protein 10 (nsp10)


              NSP10, eksoribonükleaz aktivitesini uyaran ve RNA metilasyon makinelerinde önemli bir rol oynayan küçük bir uyarıcı ve yapı iskelesi proteinidir ( Rogstam ve diğerleri, 2020 ). NSP10, biri α2 ve α3 sarmallarını stabilize eden Cys74, Cys77, Cys90 ve His83 kalıntılarına sahip ve diğeri C-terminalini stabilize eden dört sistein kalıntısı olan Cys117, Cys120, Cys128, Cys130 olmak üzere iki çinko bağlama bölgesinden oluşur. NSP10 proteininin ( Krafcikova, Silhan, Nencka ve Boura, 2020)). Yerleştirme çalışması, fitokimyasallar kitaplığına karşı NSP10'un (PDB ID: 6ZCT) kristal yapısı kullanılarak gerçekleştirilmiştir. Bu durumda, çoğunlukla tüm ligandlar, Ellagik asit ve Isorhamnetin dışında oldukça uygun ACE (<-200 kcal/mol) ile etkileşime girdi. ACE verilerine dayanarak, Arjungenin (-467.1 kcal/mol), Arjunolik asit (-457.06 kcal/mol) ve Terminolik asidin (-456.93 kcalmol) ilk üç inhibitör olduğu gözlendi ( Ek Tablo 5 ). Tüm bu üç fitokimyasal, 2D etkileşim grafiğinden görülebildiği gibi, esas olarak NSP10'un hidrofobik kalıntıları ile etkileşime girer (Şekil 5C, 5E ve 5O) ve Ek Tablo 5 . Katılan hidrofobik kalıntılar, her durumda öngörülen bağlama cebi içinde bulunur. 1,3,6-Trigalloil glukoz (-397.95 kcalmol), Rutin (-359.1 kcalmol), Isoquercitrin (-344.28 kcalmol) ve Arjunik asit (-334.02 kcalmol) ayrıca ACE verilerine göre umut verici inhibitör özellik sergiler ( Ek Tablo 5 ) ve NSP10 ile olumlu etkileşim ( Ek Tablo 5 ). 1,3,6-Trigalloyl glukoz, hem Pro86, Pro84, Cys90, Cys74 ile H-Bağı hem de Lys87, Ala24, Pro84, Cys74, Pro86 kalıntıları ile hidrofobik etkileşim yoluyla etkileşime girer (Şekil 5A; Ek Tablo 5 ). Isoquercitrin durumunda, esas olarak Phe19, Ala18, Ile81, Ala20 kalıntıları ile gerçekleşen hidrofobik etkileşimdir (Şekil 5J; Ek Tablo 5 ). Arjunik asit durumunda, yalnızca Pro84, Tyr76, Leu92, Ile55, Trp123, Val116 kalıntıları ile hidrofobik etkileşim gerçekleşir (Şekil 5D; Ek Tablo 5 ). Tüm bu moleküllerin, protein aktivitesine karşı güçlü rekabetçi inhibisyon öneren NSP10 proteininin çinko bağlama bölgesine bağlandığı bulunmuştur.
              [IMG2=JSON][][/IMG2]

              6ZCT (Yapısal olmayan protein 10: nsp10) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloil glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F. Beta-sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak helikaz proteini (NSP13)


              NSP13 Helikaz, viral replikasyon ve proliferasyon için önemlidir ( White ve diğerleri, 2020 ). Yerleştirme çalışması için NSP13 Helikaz'ın kristal yapısı (PDB ID: 6ZSL) kullanıldı. Arjunetin, en düşük ACE'ye dayalı olarak en iyi inhibitör olarak tanımlandı, yani -393.3 kcal/mol. Hem Ser229, Ala140, Val232 ile H bağı hem de His230, Met233, Val232 kalıntıları ile hidrofobik etkileşim yoluyla etkileşir (Şekil 6 B; Ek Tablo 6 ). Arjunolik asit (-379.29 kcal/mol), 1,3,6-Trigalloyl glukoz (-339.91 kcal/mol), Beta-Sitosterol (-361.93 kcal/mol), Arjunik asit (-316.8 kcal/mol) ve Arjungenin (- 314.33 kcal/mol) ayrıca Ek Tablo 6'dan da anlaşılacağı gibi NSP13 Helikaz'a karşı umut verici bir inhibitör etki sergiler ve uygun hidrofobik etkileşimlere sahiptir (Şekil 6Sırasıyla E, 6A, 6F, 6D ve 6C). Tüm bu moleküllerin, NSP13'ün aktif bölgesinden ( Krafcikova ve diğerleri, 2020 ) ayrı bir 16.39±8.1 Â bölgesine bağlandığı, rekabetçi olmayan tipte inhibisyona işaret ettiği bulunmuştur.


              6ZSL (Helicase) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloyl glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F. Beta- sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. İlaç hedefi olarak ana proteaz (7COM)


              Ana proteaz, viral transkripsiyon ve replikasyona aracılık etmede anahtar bir rol oynar ( Jin ve diğerleri, 2020 ). Bu, SARS CoV 2'nin en önemli enzimlerinden biri olarak kabul edilir ve çeşitli çalışmalarda birincil ilaç hedefi olarak kullanılır ( Jin ve diğerleri, 2020 ). Ana proteazın kristal yapısı (PDB ID: 7COM) alındı ​​ve on beş fitokimyasal kitaplığa karşı yerleştirmeye tabi tutuldu. Bunların tümü, Ellagik asit dışında oldukça uygun ACE (<-200 kcal/mol) ile proteinin aktif bölgesine ( Jin ve diğerleri, 2020 ) bağlanır. Bunlar arasında 1,3,6-Trigalloyl glukoz en düşük ACE değerine sahip (-421.03 kcal/mol) en iyi inhibitör olarak bulundu. Esas olarak, öngörülen bağlama cebinde bulunan Met49, Leu50, Pro168, Gln192, Met165, Asp187, His41 hidrofobik tortuları ile etkileşime girer (7 A; Ek Tablo 7 ). Arjunetin (-363.46 kcal/mol), Arjungenin (-316.44 kcal/mol), Arjunolik asit (-303.57 kcal/mol), Beta-Sitosterol (-317.28 kcal/mol), Daucosterol (-350.94 kcal/mol), Terminolik asit (-346.53 kcal/mol) ayrıca ACE verilerinden de anlaşılacağı gibi önemli inhibitör özellikler sergiler ve ana proteazın kristal yapısı ile uygun moleküler etkileşim gösterir. Hepsi, 2B etkileşim grafiğinde gözlemlendiği gibi, esas olarak hidrofobik etkileşim yoluyla etkileşime girer (7) ve Ek Tablo 7 .

              Ayrı bir pencerede aç
              Şekil 7
              7COM (Ana proteaz) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloyl glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E. Arjunolik asit, F. Beta -sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. RNA Bağımlı RNA polimeraz (RdRp) – (6M71) ilaç hedefi olarak


              RNA'ya bağımlı RNA polimeraz (RdRp) NSP12, viral replikasyon ve transkripsiyonda çok önemli bir rol oynayan iki kofaktör NSP7 ve NSP8'in yardımıyla viral RNA sentezini katalize eder ( Gao ve diğerleri, 2020 ). ACE verilerine dayanan NSP12'nin kristal yapısına (PDB ID: 6M71) karşı yerleştirme çalışmamız, Arjunetin'in NSP12'ye karşı en iyi inhibitör (-404.57 kcal/mol) olduğunu ortaya koydu ( Ek Tablo 8 ). Arjunetin esas olarak NSP12'nin yüksek hidrofobik kalıntıları ile etkileşime girer, yani Val330, Val398, Leu271, Val675, Phe396, Pro328 (Şekil 8 B, Ek Tablo 8 ). Arjungenin (-370.67 kcal/mol), Arjunik asit (-385.79 kcal/mol), Arjunolik asit (-364.58 kcal/mol), Beta-Sitosterol (-340.7 kcal/mol), Daucosterol (-303.09 kcal/mol) ve Isoquercitrin (-330.31 kcal/mol) ayrıca yüksek inhibitör özellikler gösterir ( Ek Tablo 8 ). Arjungenin, Arjunik asit, Arjunolik asit ve Beta-Sitosterol durumunda, 2D etkileşim grafiğinden de anlaşılacağı gibi etkileşimin doğası tamamen hidrofobiktir (Şekil 8Sırasıyla C, 8D, 8E ve 8F) ve Ek Tablo 8 . Daucosterol ve Isoquercitrin, hem H bağı hem de alkil hidrofobik etkileşimler yoluyla etkileşime girer (Şekil 8H ve 8J, Ek Tablo 8 ). 6M71'de bu moleküllerin çoğunun RdRp'nin arayüz alanına bağlandığı bulunmuştur. Arayüz alanı, NiRAN ve polimeraz alanı arasında bir bağlayıcı görevi görür. Bu alanın poli-protein kompleksinin Nsp8 proteini için bağlayıcı ortak olarak çalıştığı da bilinmektedir ( Dwivedy ve diğerleri, 2021 ). Bu moleküllerin bu alana bağlanması, poliprotein kompleksinin oluşumunu engelleyebilir ve ayrıca fonksiyonel alanlar arasındaki bağlantıyı bozabilir.


              6M71 (RNA-bağımlı RNA polimeraz (RdRp) NSP12) ile aşağıdaki fitokimyasallar arasındaki etkileşim bölgesinin 2B etkileşim grafiği: A. 1,3,6 Trigalloil glukoz, B. Arjunetin, C. Arjungenin, D. Arjunik asit, E Arjunolik asit, F. Beta-sitosterol, G. Chebulik asit, H. Daucosterol, I. Ellagik asit, J. Isoquercitrin, K. Isorhamnetin, L. Luteolin, M. Quercetin, N. Rutin ve O. Terminolik asit. Farklı renk şemaları ile temsil edilen tüm etkileşimler, şekilde sağ alt köşede gösterilmiştir. 1,3,6 Çok hedefli ilaç olarak Trigalloyl glukoz, Beta-Sitosterol ve Daucosterol


              Genel olarak, ACE verilerine göre (Şekil 9 ) on beş fitokimyasalın tümü için 1,3,6 Trigalloyl glukoz ve Beta-sitosterolün ACE değerlerinin diğer on iki ligandla karşılaştırıldığında önemli ölçüde düşük olduğu, yani sırasıyla -332.14 ± 55.74 ve -324.75 ± 36.98 kcal/mol olduğu görülebilir. Daucosterol ayrıca, NSP13 Helikaz (PDB ID: 6ZSL) dışındaki tüm proteinler için çok düşük ACE verilerine (-335.67 ± 104.79 kcal/mol) dayalı olarak oldukça etkili bir inhibitördür. Bunların dışında Arjunetin, Arjungenin, Arjunik asit ve Arjunolik asitin ACE değerleri de sekiz proteinden altısına karşı umut verici inhibitör etki sergilediklerini düşündürmektedir. ADME/T çalışmalarına göre (Tablo 5 ), Arjunetin ve 1,3,6 Trigalloyl glukoz konvansiyonel ilaçlar olarak uygun değildir.
              Şekil 9
              Ayrı bir pencerede aç
              Şekil 9
              Ligandların kenetlenme etkileşimlerinin Atomik Temas Enerjisinin (ACE) ortalama değeri. Hata çubuğu, sekiz proteinin tümüne karşı yürütülen yerleştirme analizinden bireysel fitokimyasalların ortalama ACE değerlerinin standart sapmasını temsil eder.

              Git: Tartışma


              Çalışmamızda, hedef proteinin herhangi bir amino asidinin yan zincirinde herhangi bir esnekliğin olmayacağı ve ligandın hedef proteine ​​karşı önyargılı yaklaşımından kaçınmak için bağlanma cebinin tanımlanmadığı kör yerleştirme yolunu seçtik. aktif site. Kör yerleştirme yaklaşımımız öncelikle ACE verilerine ve ligand ile protein hedefi arasındaki uygun moleküller arası etkileşimlere dayanır. Yerleştirme sonuçları, önemli biyolojik işlevi olan SARS-CoV-2 proteinlerine karşı çok hedefli inhibitör ilaç olarak 1,3,6-Trigalloyl glukoz, Beta-Sitosterol ve Daucosterol'ü tanımladı.

              1,3,6-Trigalloil glikoz, gallotanin kategorisine aittir. 1,3,6-Trigalloyl glikozun sekiz protein hedefinin tümü ile tüm yerleştirme etkileşimlerinin yapısal analizi, gallik asit gruplarının hidroksil gruplarının H-bağından sorumlu olduğunu ve benzen halkasının pi bulutunun pi-alkil etkileşimini içerdiğini ortaya çıkardı (1-​-8A).8A). Beta-Sitosterol ve Daucosterol, bitki sterol kategorisine aittir. Beta-Sitosterol, 3-pozisyonunda hidroksil grubu ile yüksek oranda hidrofobik steroid parçasına sahiptir ve Daucosterol, 3-pozisyonunda Beta-sitosterolün glukozitidir. Beta-Sitosterol, esas olarak dört hidrofobik kaynaşmış alifatik halkası aracılığıyla etkileşime girer. Beta-Sitosterol'e benzer şekilde, Daucosterol de hidrofobik steroid halkaları aracılığıyla etkileşime girer (1-​-8F).8F). Bu nedenle, bu iki durumdaki etkileşimler doğaları gereği oldukça hidrofobiktir. Buna ek olarak, Daucosterol, hidroksil grubu glikoz halkası aracılığıyla H-bağını içerir (1-​-8H).8H). Arjunetin, Arjungenin, Arjunik asit ve Arjunolik asit Triterpenoid kategorisine aittir. Bu bileşiklerin kenetlenme konumlarının yapısal analizi, bu moleküllerin, doğası gereği tamamen hidrofobik olan altı kaynaşmış alifatik altıgen karbon halkası aracılığıyla etkileştiğini gösterir (Şekil 1,şekil 2,Figür 3,Şekil 4,Şekil 5,Şekil 6,Şekil 7,Şekil 8sırasıyla BE). Bu bileşikler ayrıca maruz kaldıkları hidroksil grupları ve karboksilik grupları aracılığıyla H-bağına da katılırlar. Arjunetin durumunda, aktif olarak H-bağını içeren Triterpenoid parçasına ek olarak glikozil grubuna sahiptir (1-​-8B).8B). Yukarıda bahsedilen ligandların kenetlenme etkileşimlerinin esas olarak doğada hidrofobik olduğu gözlemlendi, bu da bu ligandların hidrofobik grupları aracılığıyla hedef proteinlerin hidrofobik oluğuna kolayca eriştiğini öne sürüyor. Bu son derece elverişli hidrofobik etkileşimler nedeniyle, ACE son derece negatif hale gelir ve bu da etkileşimin geri dönüşü olmayan kendiliğinden doğasını doğrular.

              Genel olarak, galloil glikoz molekülleri, kanser önleyici ve diyabet önleyici aktiviteleriyle bilinir ( Zhang, Li, Kim, Hagerman, & Lu, 2009 ). Bildiğimiz kadarıyla, 1,3,6-Trigalloyl glukozun antiviral aktivitesi hakkında bir rapor yoktur, ancak kemik iliği kaynaklı mezenkimal kök hücreleri (bmMSC'ler) erastin kaynaklı ferroptoza karşı koruduğu bilinmektedir ( Li et al . al., 2020 ). Bu çalışmada ilk kez 1,3,6-Trigalloyl glukoz antiviral çok hedefli ilaç olarak tanımlanmıştır.

              Beta-Sitosterolün bağışıklık düzenleyici, iltihap önleyici, ülser önleyici, diyabet önleyici ve kanser önleyici faaliyetler sergilediği bilinmektedir ( Paniagua-Perez ve diğerleri, 2017 ; Parvez ve diğerleri, 2018 ; Rajavel, Mohankumar, Archunan , Ruckmani ve Devi, 2017 ). Beta-Sitosterol, kuş çiçeği ve herpes virüslerine karşı antiviral aktivite sergiler ( Parvez ve diğerleri, 2018 ), bu da antiviral ilaç olma potansiyeline sahip olduğunu düşündürür. Lin el al. Beta-Sitosterol'ün hücre bazlı tahlilden de anlaşılacağı gibi SARS-CoV 3CL pro'nun proteolitik aktivitesi üzerinde inhibitör etki ( IC50 : 1210 uM) sergilediğini bildirdi ( Lin ve diğerleri, 2005 ).

              Daucosterolün anti-kanser aktiviteleri sergilediği rapor edilmiştir ( Racavel ve diğerleri, 2017 ). Daucosterol'ün Oksijen-Glikoz Yoksunluğu/Reperfüzyon aracılı hasara karşı nöroprotektif ajan olarak hareket ettiği ve somatik hücre kaybını ve apoptotik hızı azalttığı bildirilmektedir ( Jiang ve ark., 2015 ). Daucosterol'ün antiviral aktivitesi hakkında net bir rapor olmamasına rağmen, daucosterol ve sitosterolün antiviral uygulaması CN201310488412.XA'da patentlidir ( Yunfeng & Lei, 2013 ).

              Arjunetin'in alfa-amilaz hızlandırıcısının inhibisyonu yoluyla anti-diyabetik aktiviteye sahip olduğu bilinmektedir ( Shengule, Mishra ve Bodhale, 2018 ). Moleküler yerleştirme çalışmaları hakkında yakın tarihli bir rapor, arjunetinin SARS-CoV-2 proteazına (3CL, PL ve RdRP) bağlandığını ve FDA onaylı proteaz inhibitörü ilaçlar Lopinavir ve Remdesivir'e kıyasla daha yüksek bağlanma afinitesi sergilediğini gösterdi, bu da arjunetin hakkındaki iddiamızı destekler. SARS-CoV-2 proteinlerine karşı potansiyel çok hedefli ilaç olarak ( Arumugam, Dash, Mitra, Doble ve N.Gummadi, 2020 ).

              Arjunik asit ve Arjunolik asit, Nitrik Oksit üretimini azaltarak anti-inflamatuar özellik sergiler ( Yang, Ali, Khan ve Khan, 2014 ). Yakın tarihli bir raporda, Arjunik Asit, saponinler ve tanenlerin yerleştirme çalışmaları kullanılarak SARS-CoV-2'nin (Mpro) potansiyel inhibitörleri olarak tanımlanmıştır ( Falade ve diğerleri, 2021 ), bu bulgumuzu destekler, ancak çalışmamızda bulunmuştur. SARS-CoV-2 proteinlerine karşı potansiyel bir çok hedefli ilaç olmak. Cochlospermum tinctorium kaynaklı Arjunolik asidin Epstein-Barr virüs aktivasyonu üzerindeki inhibitör etkileri hakkında bir rapor olmasına rağmen ( Diallo ve diğerleri, 1989 ), bu fitokimyasalın SARS-CoV-2 proteinlerine karşı antiviral aktivitesi hakkında net bir geleneksel rapor yoktur. Yakın tarihli bir raporda, Sherif ve ark.Rhus spp'nin 26 aktif polifenolik bileşiğinin antiviral aktivitesini inceledi . moleküler yerleştirme yaklaşımını kullanarak SARS-CoV-2 ana proteaz enzimine (M pro ; 6LU7) karşı ve ilaç benzerliği, suda çözünürlük ve sentetik erişilebilirlik skoru (SAS) analizine dayalı olarak potansiyel inhibitörler olarak altı polifenolik bileşiği tanımladı ( Sherif, Gabr, Hosny , Alghadir ve Alansari, 2021 ). Bu polifenoller esas olarak H bağı ile etkileşirken, çalışmamızda 1,3,6-Trigalloil glukoz, Beta-Sitosterol ve Daucosterol, H bağı ile birlikte esas olarak hidrofobik kalıntılar yoluyla etkileşime girer.

              Bir tür ilacın uygulanması yerine, daha fazla ıslak laboratuar deneysel doğrulaması gerektiren bu tür tedavide iki veya üç fitokimyasalın kombinasyonu denenebilir. Bu bileşenlerin yan etkileri de in vivo olarak analiz edilmelidir , ancak aşırı uygulandığında bazı hastalarda ishal dışında T. chebula'nın henüz bildirilmiş kayda değer bir yan etkisi yoktur ( Suksaeree, Wunnakup ve Monton, 2021 ). Gerçekte uygulanabilir hale getirmek için gelecekte hem in vitro hem de in vivo kapsamlı ıslak laboratuvar deneysel doğrulaması gerekli olsa da, çalışmamız T. chebula'dan fitokimyasalların uygulanmasına ilişkin bir fikir vermektedir.Bilim ve sağlık topluluklarının bitkilerden etkili ilaçlar geliştirmelerine yardımcı olabilecek COVID-19'un tedavisinde ve önlenmesinde.

              Git: Çözüm


              Çalışmamızda, T. chebula'dan ekstrakte edilebilen ve SARS-CoV-2'nin birçok fonksiyonel proteinine karşı çok hedefli inhibitörler olarak kullanılabilen çeşitli fitokimyasalların potansiyelini araştırdık. Ayurvedik veya bitkisel ilaçlar binlerce yıldır uygulanmaktadır ve hala doğal olarak elde edilen ürünler kullanılarak çok çeşitli bozuklukların tedavisinde kullanılmaktadır. Bu, SARS-CoV-2 için çok hedefli inhibitörleri bulmak için ayurveda ilaçları alanını keşfetmeye bizi motive etti ve hem antibakteriyel hem de antiviral özelliklere sahip olan T. chebula'nın cevabımız olduğunu gördük.

              Hesaplamalı analiz kullanarak, 1,3,6-Trigalloyl glukoz, Beta-Sitosterol ve Daucosterol'ün, SARS-CoV-2'nin sekiz proteininin tümüne karşı etkili inhibitörler olarak en umut verici potansiyele sahip olduğunu gözlemledik. Bunların dışında; Arjunetin, Arjungenin, Arjunik asit ve Arjunolik asit de sekiz proteinden altısına karşı umut verici bir inhibitör etki sergiledi. 1,3,6-Trigalloyl glukoz ve Arjunetin, ADME/T çalışmalarına göre ilaca benzer özelliklere sahip olmasa da, bu ikisi, SARS-CoV-2'ye karşı etkili inhibitörler olarak büyük potansiyele sahip olduklarından, uygulanabilir hale getirmek için değiştirilebilir. Doğal olarak türetilmiş bileşiklerin kullanımının kendi yararları vardır ve antiviral ilaçlar olarak kullanılmak için büyük bir potansiyele sahiptir ve bu nedenle bu alanda daha fazla araştırma yapılmalıdır.

              Git: Rakip Çıkar Beyanı


              Bu yazı ile ilgili olarak herhangi bir çıkar çatışması olmadığını beyan ederiz.

              Git: Teşekkür


              BB, bu çalışmada sürekli destekleri için Adamas Üniversitesi'ne özellikle müteşekkirdir.

              Git: Dipnotlar


              Bangalore Disiplinlerarası Üniversitenin sorumluluğunda akran değerlendirmesi.


              Ek A Bu makalenin ek verileri çevrimiçi olarak https://doi.org/10.1016/j.jaim.2022.100557 adresinde bulunabilir .


              Git: Ek A. Ek veriler


              Aşağıdakiler, bu makalenin Ek verileridir:
              Görmek için buraya tıklayın. (33K, belge)


              Git: Referanslar

              1. Arumugam S., Dash SS, Mitra K., Doble M., N.Gummadi S. COVID-19'a Karşı Umut Veren Bir Bitki Tedavisi Olarak Terminalia Arjuna Potansiyeli: DPPH Temizleme, Katalaz İnhibisyonu ve Moleküler Yerleştirme Çalışmaları. ChemRxiv. 2020 [ Google Akademik ]
              2. Baez-Santos YM, St John SE, Mesecar AD SARS-koronavirüs papain benzeri proteaz: tasarlanmış antiviral bileşiklerle yapı, işlev ve inhibisyon. Antiviral Arş. 2015; 115 :21-38. doi: 10.1016/j.antiviral.2014.12.015. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              3. Bhowmik D., Nandi R., Jagadeesan R., Kumar N., Prakash A., Kumar D. Yerleştirme tabanlı sanal tarama kullanılarak zarf oluşumundan ve viryon birleşmesinden sorumlu proteinleri hedefleyerek SARS-CoV-2'ye karşı potansiyel inhibitörlerin belirlenmesi , ve farmakokinetik yaklaşımlar. Genet Evol'ü enfekte edin. 2020; 84 :104451. doi: 10.1016/j.meegid.2020.104451. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              4. Chang CL, Lin CS Fitokimyasal Bileşimi, Antioksidan Aktivitesi ve Terminalia chebula Retzius Ekstraktlarının Nöroprotektif Etkisi. Kanıta Dayalı Tamamlayıcı ve Alternatif Tıp. 2012; 2012 :125247. doi: 10.1155/2012/125247. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              5. Diallo B., Vanhaelen M., Vanhaelen-Fastre R., Konoshima T., Kozuka M., Tokuda H. Deri tümörü geliştirme inhibitörleri üzerine çalışmalar. Cochlospermum tinctorium'dan triterpenlerin Epstein-Barr virüs aktivasyonu üzerindeki inhibe edici etkileri. J Nat Prod. 1989; 52 (4):879-881. doi: 10.1021/np50064a039. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              6. Dinesh DC, Chalupska D., Silhan J., Koutna E., Nencka R., Veverka V., Boura E. SARS-CoV-2 nükleokapsid fosfoprotein tarafından RNA tanımanın yapısal temeli. PLoS Patog'u. 2020; 16 (12) doi: 10.1371/journal.ppat.1009100. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              7. Dwivedy A., Mariadasse R., Ahmad M., Chakraborty S., Kar D., Tiwari S., Biswal BK NiRAN bölgesinin RNA'ya bağımlı RNA polimerazdan karakterizasyonu, SARS-CoV'ye karşı potansiyel bir terapötik hedef hakkında bilgi sağlar -2. PLoS Comput Biol. 2021; 17 (9) doi: 10.1371/journal.pcbi.1009384. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              8. Falade VA, Adelusi TI, Adedotun IO, Abdul-Hammed M., Lawal TA, Agboluaje SA Silico Pharmacol'da SARS-CoV-2 ana proteazın (M(pro)) potansiyel inhibitörleri olarak saponinler ve tanenlerin in silico araştırması . 2021; 9 (1):9. doi: 10.1007/s40203-020-00071-w. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              9. Gao Y., Yan L., Huang Y., Liu F., Zhao Y., Cao L.…Rao Z. COVID-19 virüsünden RNA'ya bağımlı RNA polimerazın yapısı. Bilim. 2020; 368 (6492):779-782. doi: 10.1126/science.abb7498. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              10. Jiang LH, Yuan XL, Yang NY, Ren L., Zhao FM, Luo BX…Chen G. Daucosterol, IGF1 sinyal yolunu aktive ederek nöronları oksijen-glukoz yoksunluğu/reperfüzyon aracılı hasara karşı korur. J Steroid Biochem Mol Biol. 2015; 152 :45-52. doi: 10.1016/j.jsbmb.2015.04.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              11. Jin Z., Du X., Xu Y., Deng Y., Liu M., Zhao Y.…Yang H. SARS-CoV-2'den M(pro)'nun yapısı ve inhibitörlerinin keşfi. Doğa. 2020; 582 (7811):289-293. doi: 10.1038/s41586-020-2223-y. [ PubMed ] [ CrossRef ] [ Google Akademik ]
              12. Joseph JS, Saikatendu KS, Subramanian V., Neuman BW, Buchmeier MJ, Stevens RC, Kuhn P. Şiddetli akut solunum sendromu koronavirüs endonükleaz nsp15'in monomerik formunun kristal yapısı, allosterik bir anahtar olarak heksamerizasyon için bir rol önerir. J Virol. 2007; 81 (12):6700–6708. doi: 10.1128/JVI.02817-06. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              13. Kang S., Yang M., Hong Z., Zhang L., Huang Z., Chen X.…Chen S. SARS-CoV-2 nükleokapsid protein RNA bağlama alanının kristal yapısı, potansiyel benzersiz ilaç hedefleme bölgelerini ortaya çıkarır. Acta Ecz Sin B. 2020; 10 (7):1228–1238. doi: 10.1016/j.apsb.2020.04.009. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              14. Kim Y., Jedrzejczak R., Maltseva NI, Wilamowski M., Endres M., Godzik A.…Joachimiak A. SARS-CoV-2'den Nsp15 endoribonükleaz NendoU'nun kristal yapısı. Protein Bilimi 2020; 29 (7):1596-1605. doi: 10.1002/pro.3873. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              15. Krafcikova P., Silhan J., Nencka R., Boura E. Sinefungine bağlı RNA başlığı oluşumunda yer alan SARS-CoV-2 metiltransferaz kompleksinin yapısal analizi. Nat Komün. 2020; 11 (1):3717. doi: 10.1038/s41467-020-17495-9. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              16. Lee D., Boo K., Woo J. Terminalia chebula kabuklarından elde edilen ekstraktların anti-bakteriyel ve anti-viral aktiviteleri. J Korean Soc Appl Biol Chem. 2011; 54 :295–298. [ Google Akademik ]
              17. Li X., Liu J., Chen B., Chen Y., Dai W., Li Y., Zhu M. Corilagin'in Kovalent Köprülenmesi Antiferroptoz Aktivitesini İyileştirir: 1,3,6-Tri-O-galloyl ile Karşılaştırma -β-d-glukopiranoz. ACS Tıbbi Kimya Mektupları. 2020; 11 (11): 2232–2237. doi: 10.1021/acsmedchemlett.0c00359. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              18. Lin CW, Tsai FJ, Tsai CH, Lai CC, Wan L., Ho TY…Chao PD Isatis indigotica kökü ve bitki kaynaklı fenolik bileşiklerin anti-SARS koronavirüs 3C benzeri proteaz etkileri. Antiviral Arş. 2005; 68 (1):36–42. doi: 10.1016/j.antiviral.2005.07.002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              19. Littler DR, Gully BS, Colson RN, Rossjohn J. SARS-CoV-2 Yapısal Olmayan Protein 9, Nsp9'un Kristal Yapısı. iBilim. 2020; 23 (7):101258. doi: 10.1016/j.isci.2020.101258. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              20. Paniagua-Perez R., Flores-Mondragon G., Reyes-Legorreta C., Herrera-Lopez B., Cervantes-Hernandez I., Madrigal-Santillan O.…Madrigal-Bujaidar E. Anti-inflamatuar Kapasitenin Değerlendirilmesi Kemirgen Testlerinde Beta-Sitosterolün Etkisi. Afr J Tradit Tamamlayıcı Altn Med. 2017; 14 (1):123–130. doi: 10.21010/ajtcam.v14i1.13. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              21. Parvez MK, Alam P., Arbab AH, Al-Dosari MS, Alhowiriny TA, Alqasoumi SI Guiera senegalensis'te antioksidan ve antiviral biyobelirteçlerin beta-amirin, beta-sitosterol, lupeol, ursolik asit analizi, doğrulanmış HPTLC yöntemleriyle ekstrakt bırakır. Suudi Eczanesi J. 2018; 26 (5):685-693. doi: 10.1016/j.jsps.2018.02.022. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              22. Rajavel T., Mohankumar R., Archunan G., Ruckmani K., Devi KP Beta sitosterol ve Daucosterol (Grewia tiliaefolia'da tanımlanan fitosteroller) hücre döngüsünü bozar ve A549 hücrelerinde apoptotik hücre ölümünü indükler. Bilim Temsilcisi 2017; 7 (1):3418. doi: 10.1038/s41598-017-03511-4. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              23. Ratha KK, Joshi GC Haritaki (Chebulic myrobalan) ve çeşitleri. Ayu. 2013; 34 (3):331–334. doi: 10.4103/0974-8520.123139. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              24. Rathinamoorthy R., Thilagavathi G. Terminalia chebula: Farmakolojik ve biyokimyasal çalışmalar üzerine inceleme. Uluslararası J Pharmtech Arş. 2014; 6 :97-116. [ Google Akademik ]
              25. Riaz Khan, Sherkheli Khan, Terminalia chebula'nın Rashid Kimyasal Bileşenleri. Nat Prod Sanayi J. 2017; 13 (2) [ Google Akademik ]
              26. Rogstam A., Nyblom M., Christensen S., Sele C., Talibov V., Lindvall T.…Kozielski F. Şiddetli Akut Solunum Sendromu Coronavirüs-2'den Yapısal Olmayan Protein 10'un Kristal Yapısı. Uluslararası Moleküler Bilimler Dergisi. 2020; 21 (19):7375. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              27. Shengule SA, Mishra S., Bodhale S. Terminalia arjuna kabuğunun standart bir hidroetanol özütünün alfa-amilaz enzimi üzerindeki inhibitör etkisi. Asya Farmasötik ve Klinik Araştırmalar Dergisi. 2018; 11 (4):366–369. doi: 10.22159/ajpcr.2018.v11i4.24019. [ CrossRef ] [ Google Akademik ]
              28. Sherif YE, Gabr SA, Hosny NM, Alghadir AH, Alansari R. Phytochemicals of Rhus spp. SARS-CoV-2 Ana Proteazının Potansiyel İnhibitörleri Olarak: Moleküler Yerleştirme ve İlaç Benzerliği Çalışması. Kanıta Dayalı Tamamlayıcı ve Alternatif Tıp. 2021; 2021 yılı: 10.1155/2021/8814890. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              29. Shin D., Mukherjee R., Grewe D., Bojkova D., Baek K., Bhattacharya A.…Dikic I. Papain benzeri proteaz, SARS-CoV-2 viral yayılımını ve doğuştan gelen bağışıklığı düzenler. Doğa. 2020; 587 (7835):657-662. doi: 10.1038/s41586-020-2601-5. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              30. Suksaeree J., Wunnakup T., Monton C. Chatuphalathika bitkisel tarifinde bulunan bitki bileşimlerinin sinerjik antioksidan aktivitesi: Terminalia chebula Retz. var. chebula, Terminalia arjuna Wight ve Arn., Terminalia bellirica (Gaertn.) Roxb. ve Phyllanthus emblica L. Geleneksel Tıpta Gelişmeler. 2021 doi: 10.1007/s13596-021-00585-4. [ CrossRef ] [ Google Akademik ]
              31. Sutton G., Fry E., Carter L., Sainsbury S., Walter T., Nettleship J.…Stuart DI SARS-koronavirüsünün nsp9 kopya proteini, yapı ve işlevsel anlayışlar. Yapı. 2004; 12 (2):341–353. doi: 10.1016/j.str.2004.01.016. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              32. Upadhyay S., Tripathi PK, Singh M., Raghavendhar S., Bhardwaj M., Patel AK Ana proteazını hedefleyen SARS-CoV-2'ye karşı potansiyel bir terapötik seçenek olarak şifalı bitkilerin değerlendirilmesi. Fitoterapi Araştırması. 2020; 34 (12):3411–3419. doi: 10.1002/ptr.6802. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              33. Vaidya HD, Sawarkar P. Covid-19 için Ayurvedik Çözümler - Kavramsal Bir Çalışma. Uluslararası Farmasötik Bilimler Araştırma Dergisi. 2020; 11 (SPL1):286–291. doi: 10.26452/ijrps.v11iSPL1.2714. [ CrossRef ] [ Google Akademik ]
              34. White MA, Lin W., Cheng X. SARS-CoV2 Nsp13 Helikazını Hedefleyen COVID-19 İnhibitörlerinin Keşfi. bioRxiv. 2020 doi: 10.1101/2020.08.09.243246. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              35. WHO. (2020). COVID-19 aday aşılarının taslak görünümü: DSÖ.
              36. WHO. (2021). DSÖ Coronavirüs Hastalığı (COVID-19) Panosu. https://covid19.who.int/ adresinden 2021/1/1, 2021 alındı
              37. Xu X., Zhai Y., Sun F., Lou Z., Su D., Xu Y.…Rao Z. Fare hepatit virüsü yapısal olmayan protein nsp15'in heksamerik yapısı tarafından ortaya çıkarılan yeni antiviral hedef. J Virol. 2006; 80 (16):7909-7917. doi: 10.1128/JVI.00525-06. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
              38. Yang MH, Ali Z., Khan IA, Khan SI Terminalia chebula'dan izole edilen bileşenlerin anti-inflamatuar aktivitesi. Nat Prod Commun. 2014; 9 (7):965-968. [ PubMed ] [ Google Akademik ]
              39. Yunfeng, W. ve Lei, Z. (2013). Çin Patent No.
              40. Zhang J., Li L., Kim SH, Hagerman AE, Lu J. Anti-kanser, anti-diyabetik ve penta-galloil-glukozun diğer farmakolojik ve biyolojik aktiviteleri. Ecza Arş. 2009; 26 (9):2066–2080. doi: 10.1007/s11095-009-9932-0. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]

              Yorum yap


              • #8
                Herpes Papilloma Virüsü Karahalilenin Etkisi. Cilt Kanserine Karşı Karahalile.


                Epstein-Barr virüsüne ( EBV) Karşı Kara Halile Kapsülün Etkileri Nelerdir


                Kronik Yorgunluk Sendromu Nasıl Tedavi Edilir


                Karahalile Nedir Hangi Rahatsızlıklar İçin Şifa Kaynağıdır.

                Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 21 September 2022, 09:59 ) değiştirilmiştir.

                Yorum yap


                • #9
                  Karahalilenin Ebv Virüsüne Etkileri Nelerdir Ebv Virüsünden Nasıl Kurtuluruz


                  Karahalile Faydaları Nelerdir Karahalile Hangi Rahatsızlıklar için kullanılır

                  Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 21 September 2022, 10:20 ) değiştirilmiştir.

                  Yorum yap

                  Hazırlanıyor...
                  X