Duyuru

Collapse
No announcement yet.

Kaprilik asit, Caprylic Acid

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Kaprilik asit, Caprylic Acid

    Kaprilik asit, diğer mikroorganizmalar ile birlikte veya bunlar olmaksızın Candida albicans, Helicobacter pylori ve sitomegalovirüsün asbest ve karışık enfeksiyonlarının neden olduğu sık idrara çıkma, inkontinans, kronik üst solunum yolu enfeksiyonu, kök kanallı diş enfeksiyonu, ALS vb. inatçı tıbbi problemlerin etkili tedavisinde & cıva

    Yoshiaki Omura1, Brian O'Young , Marilyn Jones , Andrew Pallos , Harşa Duvvi , Yasuhiro Shimotsuura
    Bağlantılar genişletmek
    • DOI: 10.3727/036012911803860886
    Soyut

    Sık idrara çıkmanın birçok nedeni vardır. Su veya sıvı tüketildiğinde, hasta 10 veya 20 dakika içinde idrarını yapmalıdır. Sıklıkla mesane muayeneleri ve kan testleri önemli bir anormallik göstermez ve anti-bakteriyel veya anti-viral ajanlarla tedavi, semptomları önemli ölçüde iyileştirmez. İnatçı sık idrara çıkma ile idrar tutmada zorluk ve ayrıca sık öksürük, diş etinde beyaz irin, kanallı bir dişin apeksinin enfeksiyonu, yavaş iyileşen yaralar ve ALS gibi diğer inatçı tıbbi problemlerde, yazarlar sıklıkla bir arada var olduğunu bulmuşlardır. Candida albicans (CA), Helicobacter pylori (HP) & Cytomegalovirus (CMV) enfeksiyonları, ilave bakteriyel (Chlamydia trachomatis, vb.) veya viral enfeksiyonlar ve Hg birikintileri olsun veya olmasın, viral enfeksiyonlar ve artan Asbest ile. Üretranın dış sfinkterlerinde ve (1) 2 üreter açıklığı arasında yatay, bant benzeri bir alandan oluşan idrar kesesinin Trigonunda CA, HP ve CMV ile çeşitli derecelerde karışık enfeksiyonlar bulduk. 2) Trigone'nin idrar kesesinin alt yarısındaki huni şeklindeki kısmı. Önemli miktarlarda CA, HP ve CMV'nin bir arada bulunması durumunda enfeksiyon, HP ve CMV için başka türlü etkili ilaçlarla azaltılamaz. Bununla birlikte, oral veya harici olarak uygulanan bir optimal Diflucan dozu veya Kaprilik asit, semptomları hızla önemli ölçüde azalttı. En iyi tedavinin, "CaprilyCare" veya "Caprylic Asit" şeklinde oral olarak optimal bir Kaprilik asit dozunun bir anti-viral ajan olarak bir Omega-3 Balık Yağı kapsülü olan Amoksisilin ile bir kombinasyonunu vermek olduğunu bulduk. Z maddesi ve bir Kişniş tableti. Optimum bir Kaprilik asit dozunun normal hücre telomerini (NCT) istenen 750 ng BDORT birimine yükselttiğini, Diflucan'ın NCT'yi yalnızca 25 ng BDORT birimi artırdığını ve Omega-3 balık yağı ile her iki ilacın karşılıklı olarak iptaline yol açtığını bulduk. . Bu nedenle, Kaprilik asit Diflucan'dan daha üstün ve daha ucuzdur ve kansere karşı, yaşlanmaya karşı, Alzheimer hastalığına karşı, otizme karşı, enfeksiyona karşı ve genel dolaşım iyileştirmesi için potansiyel uygulamaya sahiptir.

    Hindistan Cevizi Yağı, Doğal Mucize mi?​​

    Hindistan Cevizi Yağı, Coconut Oil
    Bir grup doktor Hindistan cevizi yağındaki antibakteriyel özellikleri vurgulayıp özellikle mantarsal (CANDİDA, BAĞIRSAK MANTARI) hastalıklarla mücadele edenlerin diyetlerine mutlaka eklemeleri gerektiğini savunuyor. Diyabet, kanser, böbrek, karaciğer sorunlarından tutun da Alzheimer ve Parkinson’a kadar pek çok hastalığa olumlu faydalarını savunan da var. Hindistan cevizi yağı binlerce yıldır geleneksel tıpta kullanılmakta olan bir yağdır ve batı tıbbında da son 60 yıldır haklı yerini almaya başlamıştır. Son yıllarda yapılan pek çok araştırmalarla, Hindistan cevizi yağının hem besin olarak hem de doğal deva olarak yıldızı parlamaya başlamış ve kullanan insanların olumlu yorumları ile de desteklenmiş, çeşitli araştırmalar sayesinde de bu yıldız kolay kolay sönmeyecek gibidir. Hindistan cevizi yağının faydası ile ilgili sadece ABD’de yayınlanmış 1000’den fazla bilimsel makale var. Lurik Asit, Kaprik Asit, Kaprilik Asit, ve Orta Zincirli Trigliseridlerle ilgili ise 25,000 den fazla makale var.

    Hindistan Cevizi, Coconut;
    Hindistan cevizi yağının temel kimyası 1920 ve 1930’larda keşfedilmeye başlandı. O yıllarda yapılan araştırmalar sonucu görülmüştür ki diğer bütün yağlara kıyasla Hindistan cevizi yağı belirgin biçimde farklılıklar göstermektedir. Hindistan cevizi yağının ağırlıklı olarak orta zincirli yağ asitleri ailesine ait olduğu ve bu asitlerin Orta Zincirli Trigliserid (MCT = Medium Chain Triglycerides) formunda oldukları o yıllarda yapılan araştırmalarla da tespit edilmiştir. (MCT yağların ile ilgili daha detaylı bilgiyi bu linkten bulabilirsiniz.) 1930 ve 1940’larda ise bazı doktorlar Hindistan cevizi yağının diyete eklendiğinde pek çok besin maddesinin emilimini arttırdığını fark etmişlerdir. Bu keşiften sonra araştırmacılar bebek ve çocuklarda besin emilimi eksikliği ve beslenme bozukluklarına karşı Hindistan cevizi yağının kullanımını araştırmaya yönelmişler ve neticede Hindistan cevizi yağı bebek mamalarına kullanılabilecek en uygun yağ olarak kabul edilmiştir. Bebeklerde, diğer besinsel yağlara kıyasla Hindistan cevizi yağı daha hızlı büyüme, kilo alımı ve genel beslenme durumunda iyileşme sağlamıştır 1. Bugün hala daha Hindistan cevizi yağı bebek mamalarında standart gıda maddesi olarak kullanılmaktadır. Günümüzde hastanelerin Yoğun Bakım odalarında ya da yeni doğan mamalarında Hindistan cevizi yağı ya da MCT’ler kullanılmakta ve hastaların iyileşme zamanını kısalıp, genel besin emilimini artmaktadır.2 MCT’lerin sindirilmesindeki farklılık pek çok hastalığın tedavisine ışık tuttuğu için son derece mühimdir. Bu buluşları müteakip 1960 ve 1970’lerde yoğun araştırmalar ve klinik çalışmalar sonucu da Hindistan cevizi yağının tedavi ettiği hastalıklar listesi uzamaya devam etmiştir. Tıkanma Sarılığı-obstructive jaundice3, Kistik fibroz-cystic fibrosis4, kronik bir gastroenterit olantropical sprue5, a-beta-lipoprotenaemia6, Bağırsak lenfangiektazisi -intestinal lymphangiectasia7, Pankreas Yetmezliği, pancreatic insufficiency8, bu hastalıklardan sadece birkaçıdır, ayrıca yine bağırsak ameliyatlarını müteakip iyileşme dönemini hızlandırmakta da son derece olumlu katkısı vardır.9Hindistan cevizi Yağı kan şekerini dengelediği için diyabet vakalarında da olumlu sonuçlar vermektedir. MCT’ler insülin salgılamasını ve hassasiyetini kontrol edebildikleri için diyabetin asıl altında yatan sebepleri de tersine çevirebilmektedir.10Hindistan cevizi yağının çok güçlü anti-kanserojen özellikleri vardır. Kanserli laboratuvar hayvanları Hindistan cevizi yağı ihtiva eden diyetle beslendiklerinde kanserojen etkilerin tamamen terse döndüğü ispat edilmiştir.11Hindistan cevizi yağı alkol, bakteri, uyuşturucu ve kimyasallar gibi toksik maddelerin sebep olduğu karaciğer hastalıklarını önleyebilir, hatta tedavi edebilir.12 Yine vücuttaki, ince bağırsak, kalın bağırsak, böbrekler ve pankreas gibi diğer organlara da aynı olumlu etkileri vardır.13-15

    Hindistan Cevizi, Coconut;
    Kalp hastalıklarının neticesinde kalpte enerji yetmezliği meydana geldiği dolayısıyla oksijen ve besin tedariki iyileştiğinde de kalbin fonksiyonlarının çarpıcı ölçülerde iyileştiği ispat edilmiştir. 16 Hindistan cevizi yağının kalbe dost olması hatta terapatik özellikler taşıdığı kalp hastalıklarının en az olduğu Hindistan cevizi yiyen toplumlarda yapılan araştırmalarla da doğrulanmıştır. 17KANSER, DİYABET, KOLİT, KARACİĞER RAHATSIZLIKLARI, SAFRA KESESİ RAHATSIZLIKLARI ve DEMANS (BUNAMA, ALZHEİMER) gibi pek çok dejeneratif hastalıklar da yine düzenli Hindistan cevizi tüketen topluluklarda en az rastlanan hastalıklardır. Tüm bunlar rastlantı mıdır yoksa düzenli olarak tükettikleri Hindistan cevizinden midir acaba? Belgelenmiş, ispat edilmiş antimikrobiyal, antioksidant, antiülseröjen, ağrı kesici, mutasyon önleyici, ateş düşürücü, iltihap önleyici gibi pek çok özelliği bulunan hindistancevizi yağının artık pek çok sağlık sorununu tedavi ettiği kabul görmüştür. 18-19Tüm bu bilgiler ışığında diyebiliriz ki Hindistan cevizi yağı aslında kalbe dost, sağlıklı bir yağdır ve vücudumuzu pek çok açıdan destekleyerek daha düzgün çalışmasına yardımcı olur.

    Hindistan Cevizi Yağının araştırmalarla desteklenmiş faydaları şöyle sıralanabilir :
    1.
    Kan şekerini desteklemeye yardımcı, diyabet hastalarında önleyici ve tedavi edici
    2. Böbrek ve safra kesesi hastalıklarını önleyici ve tedavi edici
    3. Kan lipitlerini normalleştirici
    4. Alkol ve diğer toksinlerin karaciğere yaptığı hasarı önleyici
    5. İltihap önleyici, Ateş düşürücü
    6. Antiviral, antibakterel ve antifungal (CANDİDA) (özellikleri sayesinde pek çok bakteriyel hastalığı önleyici
    7. Kansere karşı mücadele edici
    8. Cildi ve saçları besleyici
    9. Sindirimi kolaylaştırıcı ve teşvik edici


    Referanslar1. Vaidya, U.V., et al. Vegetable oils fortified feeds in the nutrition of very low birthweight babies. Indian Pediatr 1992;29:1519-1527.
    2. Wang, X, et al. Enteral nutrition improves clinical outcome and shortens hospital stay after cancer surgery. J Invest Surg 2010;23:309-313.
    3. Burke, V. and Danks, D.M. Medium-chain triglyceride diet: its use in treatment of liver disease. Brit Med J 1966;2:1050-1051.
    4. Kuo, P.T. and Huang, N.N. The effect of medium chain triglyceride upon fat absorption and plasma lipid and depot fat of children with cystic fibrosis of the pancreas. J Clin Invest 1965;44:1924-1933.
    5. Cancio, M. and Menendez-Corrrada, R. Absorption of medium chain triglycerides in tropical sprue. Proc Soc Exp Biol (NY) 1964;117:182-185.
    6. Isselbacher, K.J., et al. Congenital beta-lipoprotein deficiency: an hereditary disorder involving a defect in the absorption and transport of lipids. Medicine (Baltimore) 1964;43:347-361.
    7. Holt, P.R. Dietary treatment of protein loss in intestinal lymphangiectasia. Pediatrics 1964;34:629-635.
    8. Greenberger, N.J., et al. Use of medium chain triglycerides in malabsorption. Ann Internal Med 1967;66:727-734.
    9. Zurier, R.B., et al. Use of medium-chain triglyceride in management of patients with massive resection of the small intestine. New Engl J Med 1966;274:490-493.
    10. Kono, H., et al. Dietary medium-chain triglycerides prevent chemically induced experimental colitis in rats. Transl Res 2010;155:131-141.
    11. Baba, N., et al. Enhanced thermogenesis and diminished deposition of fat in response to overfeeding with diets containing medium chain triglycerides. Am J Clin Nutr 1982;35:678-682.
    12. Zakaria, A.A., et al. Hepatoprotective activity of dried- and fermented-processed virgin coconut oil.Evidence-Based Complementary and Alternative Medicine2011;2011:142739.
    13. Monserrat, A.J., et al. Protective effect of coconut oil on renal necrosis occurring in rats fed a methyl-deficient diet. Ren Fail 1995;17:525-537.
    14. Mizushima, T., et al. Prevention of hyperlipidemic acute pancreatitis during pregnancy with medium-chain triglyceride nutritional support. Int J Pancreatol1998;23:187-192.
    15. Kono, H., et al. Medium-chain triglycerides enhance secretory IgA expression in rat intestine after administration of endotoxin. Am J Physiol Gastrointest Liver Physiol 2004;286:G1081-G1089.
    16. Labarthe, F., et al. Medium-chain fatty acids as metabolic therapy in cardiac disease. Cardiovasc Drugs Ther 2008;22:97-106.
    17. Prior, I.A., et al. Cholesterol, coconuts, and diet of Polynesian atolls: a natural experiment: the Pukapuka and Tokelau island studies. Am J Clin Nutr 1981;34:1552-1561.
    18. Zakaria, A.A., et al. In vivo antinociceptive and anti-inflammatory activities of dried and fermented processed virgin coconut oil. Med Princ Pract 2011;20:231-236.
    19. Intahphuak, S., et al. Anti-inflammatory, analgesic, and antipyretic activities of virgin coconut oil.Pharm Biol 2010;48:151-157.
    - See more at: Hindistan Cevizi Yağı “Doğal Mucize mi? | Buket Kaptan | Holistik Sağlık


    Seleznov Sakan
    COCOS LNK kullandım KABIZLIK, CANDİDA, KAŞINTI ve DEPRESYONDAN KURTULDUM teşekkürler İbrahim Gökçek hocam.
    KAYNAK

    Ibrahim Sarıoğlu
    2 AYDAN BERİ COCOS LNK KULLANIYORUM FAYDALARINI GÖRMEYE BAŞLADIM teşekkürler hocam.
    KAYNAK

    Murat Dede
    COCOS LNK siparişim elime ulaştı diğer ürünlerle birlikte HEMEN KULLANMAYA BAŞLADIM uzun zamandır geçmeyen BURNUMUN İÇİNDEKİ YARA BİR İKİ GÜNDE HEMEN GEÇTİ geçti inşallah KANDİDALARDAN DA KISA SÜREDE KURTULACAĞIM çok teşekkürler hocam.
    KAYNAK

    Oguz Erkara
    COCOS LNK ÜRÜNÜNÜ GASTRİT İÇİN KULLANIYORUM ÇOK FAYDASINI GÖRDÜM. Yemekten önce veya sonra 1 yemek kaşığı. SANCIYI AĞRIYI HAFİFLETİYOR
    KAYNAK

    İsmail Yılmazer
    Selam ŞEKER HASTALIĞINA BAĞLI GÖZ KURULUĞU OLAN HASTAMA COCOS LNK İÇİRDİM. İÇTİĞİ SÜRECE GÖZLERİ KURUMADI GÖRME KESKİNLİĞİ ARTTI BENCE ÇOK ÇOK DEĞERLİ BİR KARIŞIM OLMUŞ
    KAYNAK

    Eren Darıcı
    COCOS LNK ÇOK GÜZEL BİR ÜRÜN. Biz kullandık ÇOK FAYDASINI GÖRDÜK.. GERÇEKTEN PAMUK GİBİ BİR ÜRÜN kullandığınız zaman anlarsınız.
    KAYNAK

    Sedat Çalışkan
    Hocam bu COCOS LNK 30 YILLIK TIKALI BURNUMU 2 GÜNDE AÇTI. Bir miktar yağı burnumun içine sürüyorum. İKİ GÜNDÜR BURNUMDAN İLTİHAP AKIYOR NEFES ALMAK NE GÜZELMİŞ
    KAYNAK

    Gürkan Yılmaz
    Yeni adı COCOS LNK sanırım. COCOS TADI DAHA YOĞUN ON NUMARA ÜRÜN
    KAYNAK

    Cevher Zorbey
    COCS YAĞI ÜRÜNÜNÜ BEĞENDİM. kandida ve bakteriler için bulunması gereken doğal her şey mevcut.. İLK KULLANIMDAN İTİBAREN MANTARIN CAN ÇEKİŞTİĞİNİ GÖREBİLİRSİNİZ. ÇOK MEMNUN KALDIM
    KAYNAK

    Serkan Kansoy
    Ben COCOS SİPARİŞİ VERDİM dün aldım BURUN TIKANIKLIĞI İÇİN İbrahim Gökçek önerdi ve İLK KULLANIMDA BURNUM AÇILDI HIZLI BİR ŞEKİLDE vallahi şaşırdım bu hızlı gelişime İbrahim Gökçek beye teşekkür ederim
    KAYNAK

    Meryem Teker
    Gerçekten İbrahim hocaya ne kadar dua etsek azdır. Artık COCOS LNK - LAHANA MİX ile normal hayatıma ESKİ HAYATIMA GERİ DÖNÜYORUM tedaviye daha devam yavaş yavaş. Sağlığıma kavuşuyorum sadece düzenli kullanmak önemli.
    KAYNAK

    Ali Ali
    Neredeyse iki haftadır devam eden KARINDA ŞİŞLİK, GAZ SIKIŞMASI ve KABIZIK vardı. KORDİSEP O SETİ ve COCOS LNK ürünlerini aldım. Üç gün içinde etkisini görmeye başladım teşekkürler hocam.
    KAYNAK

  • #2
    Diyet Gıda Bileşenleri Kaprik Asit ve Kaprilik Asit Çoklu Hedefleme Yoluyla Candida albicans'ta Virülans Faktörlerini Engeller

    ashwini jadhav1, Supriya Mortale1, Shivkrupa Halbandge1, Priyanka Jangid1, Rajendra Patil2, Wasudev Kapısı2, kıran haratı3, Sankunny Mohan Karuppayil1
    Bağlantılar genişletmek
    • DOI: 10.1089/jmf.2017.3971
    Soyut

    Kaprik asit ve kaprilik asit, diyet gıda bileşenleridir. İnsan patojenik maya Candida albicans'ta morfogenez, yapışma ve biyofilm oluşumu gibi virülans faktörlerini engelledikleri bulunmuştur. Çalışmamız, mayadan hifale sinyal iletim yollarının kaprik asit ve kaprilik asitten etkilendiğini göstermiştir. Serum kaynaklı morfogenez ile ilişkili genlerin ekspresyon profili, her iki yağ asidi ile muamele ile Cdc35, Hwp1, Hst7 ve Cph1 ekspresyonlarının azaldığını gösterdi. Hücre uzama geni Ece1, kaprilik asit tedavisi ile şaşırtıcı bir şekilde 5208 kat aşağı regüle edildi. Nrg1 ve Tup1, hiphal oluşumunun negatif düzenleyicileri, kaprik veya kaprilik asit varlığında aşırı eksprese edildi. Hücre döngüsü çalışmaları, kaprik ve kaprilik asitlerin hücre döngüsünü G2/M ve S fazında durdurduğunu ortaya koydu. Mayadan hifale geçiş gibi virülans faktörlerinin hedeflenmesi, fırsatçı mantar enfeksiyonlarının tedavisi için etkilidir. Bu araştırma, hem kaprik hem de kaprilik asidin C. albicans maya enfeksiyonlarının tedavisinde etkili müdahaleler olabileceğini düşündürmektedir.

    Ibadan, Nijerya'da Candida türleri üzerinde hindistancevizi yağının in vitro antimikrobiyal özellikleri.

    Ogbolu DO 1 , Oni AA , Daini OA , Oloko AP .

    Antimikrobiyal direncin ortaya çıkması, mantar öldürücü etkilere sahip daha az sayıda antifungal ajanın mevcudiyeti ile birleştiğinde, bu çalışmayı çevremizdeki Candida türlerini karakterize etmeye ve bu tür antifungal bir ajan olarak virgin hindistan cevizi yağının bu türler üzerindeki etkinliğini belirlemeye yönlendirmiştir. 2004'te, 52 üniversite Candida türü izolatı, Ibadan, Nijerya'daki Üniversite Üniversite Hastanesi, Tıbbi Mikrobiyoloji Laboratuvarı'na gönderilen klinik örneklerden elde edildi. Bakir hindistancevizi yağı ve flukonazole duyarlılıkları agar-well difüzyon tekniği kullanılarak incelenmiştir. Candida albicans klinik örneklerden en yaygın izolattı (17); diğerleri Candida glabrata (dokuz), Candida tropicalis (yedi), Candida parapsilosis (yedi), Candida stellatoidea (altı) ve Candida krusei (altı) idi. C. albicans, hindistancevizi yağına (% 100), minimum inhibe edici konsantrasyona (MIC)% 25 (1: 4 dilüsyon) duyarlılık gösterirken, flukonazol, 64 mikrog / mL'lik bir MIC'de% 100 duyarlılığa sahipti (1: 2 dilüsyon). ). C. krusei,% 100 MIC (seyreltilmemiş) ile hindistancevizi yağına karşı en yüksek direnci gösterirken, flukonazolün> 128 mikrog / mL'lik bir MIC'si vardı.. Hindistan cevizi yağının flukonazol ile karşılaştırıldığında% 100 konsantrasyonda Candida türlerine karşı aktif olduğu dikkat çekicidir. Ortaya çıkan ilaca dirençli Candida türleri göz önüne alındığında, mantar enfeksiyonlarının tedavisinde hindistan cevizi yağı kullanılmalıdır.

    https://www.ncbi.nlm.nih.gov/pubmed/17651080

    İşte Hindistan cevizi yağının bilmediğiniz 15 faydası…
    Hindistan cevizi yağı orta zincirli yağ asitleri (MCFA)'ni içerir. Trans yağlara oranla oldukça sağlıklı bir yağ asididir ve metabolizmayı hızlandırır. Böylece kilo verimi hızlandırır. Bildiğiniz ve denediğiniz en etkili makyaj temizleyicileri kadar etkilidir. Hatta en dayanıklı su geçirmez maskaranın bile Hindistan cevizi yağı karşısında hiçbir şansı yok. Bir parça pamuğa bir çay kaşığı Hindistan cevizi yağını dökün,cildinize uygulayın ve 10 -15 dakika bekletin.Makyajın eriyip gittiğini göreceksiniz. Hindistan cevizi yağı için doğal bir deodorant diyebilir. Bu yağın içerisinde bulunan laurik asitler, kötü kokuların oluşumuna engel oluyor. Hindistan cevizi yağı antifungal ve antibakteriyel özelliklere sahiptir. Bir tatlı kaşığı Hindistan cevizi yağını bir bardak su ile seyreltin ve gargara yapın. Ağzınızın çok ferah koktuğunu hissedeceksiniz. Aynı zamanda ağızdaki zararlı bakteriler yok etmeye yardımcı da olacaktır. Hindistan cevizi yağı; anti-bakteriyel bir özelliğe sahiptir ve mantar oluşumunu da engeller. Bir parça karbonatla karıştıracağınız hindistancevizi yağıyla dişlerinizi fırçalayabilirsiniz. Bunu ayda 1 kez uygulayın ve gerekirse diş hekiminize de danışın.ak uçlarınızla Hindistan cevizi yağını göz altlarınıza masaj yaparak uygulayın. Göz altı torbalarının ve ince çizgileriGöz bakımı için fazladan para harcamanıza gerek yok! Her gece yatmadan 30 dakika önce,parmn onarılmasında Hindistan cevizi yağı etkili bir seçenektir. Eğer beden temizliği için jilet kullanıyorsanız,traş sonrası tahriş ve cilt kuruluğunu önlemek için Hindistan cevizi yağı kullanın. Traş köpüğü veya kullandığınız köpürtücünün içine de ekleyebilirsiniz, tek başına da kullanabilirsiniz. Özellikle hamile kadınların evde bir kavanoz Hindistan cevizi yağı bulundurmasında fayda var. Oluşacak çatlakların derecesinin azalmasında, görüntünün düzelmesinde Hindistan cevizi yağının katkısı olacaktır. Vücudu nemlendiren Hindistan cevizi yağı, saçlara da çok iyi geliyor. Saça nem, parlaklık ve yumuşaklık kazandıran Hindistan cevizi yağını saçınıza sürün ve 15 dakika bekletin. Ardından ılık suyla saçlarınızı durulayın. Hindistan cevizi yağı güzellik rutininize eklemeniz gereken doğal bir mucize. Peeling ( vücuttaki ölü derileri soyma işlemi) için de kullanabileceğiniz bu yağ ile pürüzsüz ve yumuşacık bir cilde sahip olabilirsiniz. Hindistan cevizi yağını ve tozşekeri karıştırın. Ardından vücudunuza sürün ve ılık suyla durulayın. Emziren bir anneyseniz, anne sütünün bebeğin gelişiminde ne kadar önemli olduğunu da biliyorsunuzdur. Hindistan ceviz yağı, içeriğindeki sağlıklı yağlar sayesinde anne sütünün artmasına yardımda bulunuyor. Tırnaklarınız zayıfsa ve hemen kırılıyorsa,her gece yatmadan önce hindistan cevizi yağı ile masaj yapın.Hem tırnaklarınızın hem de tırnak çevresindeki derinin güçlendiğini fark edeceksiniz. Kadınların en büyük sorunudur,makyaj fırçası temizliği...Hindistan cevizi yağı bu soruna da çare oluyor.Tek yapmanız gereken ayda bir kez, anti bakteriyel bir sabunun içine bir çay kaşığı Hindistancevizi yağı karıştırıp, fırçalarınızı temizlemek!Ne kadar kolay temizlendiğini görünce siz de çok şaşıracaksınız! Doğal Hindistan cevizi yağı oda sıcaklığında yarı katı hale gelir.Bu haliyle ideal bir dudak balmıdır. Dışarı çıkmadan önce bu kıvamdaki Hindistan cevizi yağını dudaklarınıza sürün ve dışarı öyle çıkın. Olumsuz çevresel koşullarda nasıl bir dudak koruması sağladığını göreceksiniz.Dudaklarınız çatlamayacak. Masaj için yarım su bardağı Hindistan cevizi yağının içine bir iki damla lavanta yağı veya nane özü ekleyin.Bu karışımla yaptıracağınız masaj,bedeninizin daha da rahatlamasını sağlayacaktır. Böcek ve sinek ısırığı,zorlama nedeniyle oluşan kas ağrıları hindistan cevizi yağı uygulayarak hafifletilebilir.

    Yorum yap


    • #3
      Biyofilme Gömülü Mikrobiyal Organizmaların Eradikasyonu için Kaprilik ve Poligalakturonik Asit Kombinasyonları

      Joel Rosenblatt , * Ruth A. Reitzel , Nylev Vargas-Cruz , Anne-Marie Chaftari , Ray Hachem ve Issam Raad
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .

      Soyut
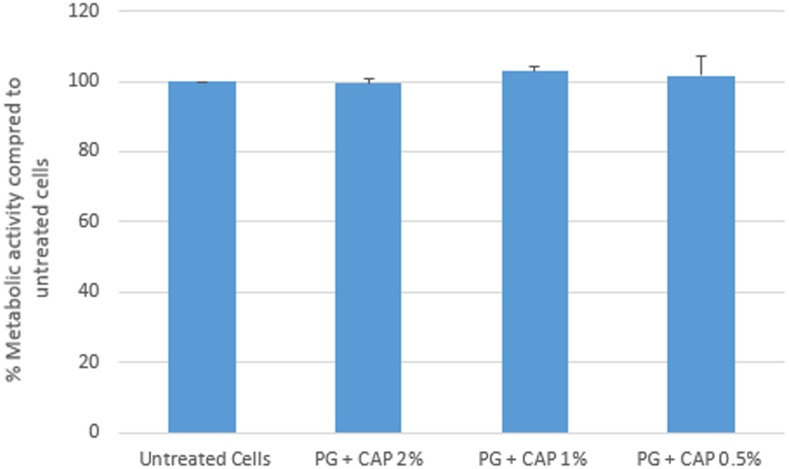
      Gıda hazırlama ve sağlık bakım ortamlarında patojenik biyofilmlerin geniş spektrumlu yok edilmesini sağlayabilen, düşük toksisiteli, antibiyotik olmayan, antimikrobiyal bileşimlere ihtiyaç vardır. Bu çalışmada, temsili hastane ve gıda kaynaklı bulaşıcı patojen biyofilmlerine (metisiline dirençli Staphylococcus aureus , çoklu ilaca dirençli Pseudomonas aeruginosa , Candida albicans , Escherichia coli ve Salmonella enteritidis). Biyofilmlere karşı antimikrobiyal sinerji, yalnızca kaprilik aside, tek başına PG asidine veya ikisinin kombinasyonlarına maruz kalan biyofilmlerde kalan canlı organizmaların miktarının belirlenmesiyle kanıtlanmıştır. Kombinasyonlar ayrıca planktonik organizmaların büyümesini sinerjik olarak inhibe etti. Kombinasyonun toksisitesi , Alamar Blue metabolik aktivite testi ve Trypan Blue dışlama hücre canlılığı testi kullanılarak kaprilik ve PG asit kombinasyonlarının özleri ile inkübe edilen L929 fibroblastları üzerinde in vitro olarak değerlendirildi. Özler, işlenmemiş kontrol fibroblastlarına göre sitotoksik tepkiler üretmedi.

      Anahtar Kelimeler: kaprilik asit, poligalakturonik asit, sinerji, biyofilm eradikasyonu, enfeksiyon

      Tanıtım
      Biyofilmler, gömülü mikroplar tarafından salgılanan koruyucu biyopolimer matrislerle kaplanmış yüzeylere bağlı üç boyutlu yoğun mikrobiyal hücre topluluklarıdır ( Costerton ve diğerleri, 1999 ; Donlan ve Costerton, 2002) .). Geniş spektrumlu, ekonomik ve dirençli organizmaların gelişimini teşvik etmeyen mikrobiyal biyofilmleri hızla yok etmeye yönelik yeni dezenfeksiyon yaklaşımları, gıda hazırlama ve depolamadan kaynaklanan hastalıkların önlenmesi ve ayrıca sağlık kurumlarında enfeksiyonların önlenmesi ve tedavisi gibi uygulamalarda önemli bir ihtiyaç olmaya devam etmektedir. dermal yaralar ve implante edilmiş tıbbi cihazlar gibi biyofilm oluşumuna elverişlidir. Hastalık Kontrol ve Önleme Merkezleri, her yıl binlerce insanın kontamine gıdaları tüketmekten ciddi sağlık ve ekonomik yüklere yol açarak hastalandığını bildirmektedir ( Ulusal Gelişmekte Olan ve Zoonotik Bulaşıcı Hastalıklar ve Gıda, Su ve Çevre Hastalıkları Bölümü, 2016). Gıda işleme ve depolama ekipmanlarının yüzeylerinde oluşan biyofilmler, yok edilmeye karşı çok dirençli olabilir ve gıda bozulmasına ve diğer ilgili ekonomik maliyetlere yol açabilir ( Van Houdt ve Michiels, 2010 ). Benzer şekilde, insan mikrobiyal enfeksiyonlarının önemli bir bölümünün biyofilmlerle ilişkili olduğu bildirilmiştir ( Miquel ve ark., 2016 ). Sonuç olarak, biyofilm kaynaklı enfeksiyonların önlenmesi ve tedavisi için biyofilmleri yok eden etkili dezenfeksiyon teknolojilerine ihtiyaç vardır. Biyofilmlerin bulunduğu enfeksiyonların tedavisi özellikle zor olabilir. Örneğin, biyofilmler kolon, rektum ve idrar yolu gibi mikrobiyal olarak kolonize ortamlarda yaraların iyileşmesini bozabilir ( Donlan ve Costerton, 2002).). Biyofilmler ayrıca kronik dermal yaralarda da sıklıkla bulunur ve iyileşmede onların inatçılığına katkıda bulunur ( James ve diğerleri, 2008 ). Ayrıca, implante edilmiş tıbbi cihazların varlığında cerrahi alan enfeksiyonları, cihaz yüzeylerinde mikrobiyal biyofilmler oluştuğunda komplikasyonları artan önemli sağlık sorunlarına yol açar ( Magill ve diğerleri, 2014 ). Candida türleri, insan dokularında en yaygın mantar kolonileştiricisidir ve tıbbi cihazla ilişkili fungemilerin önemli bir bölümünü üretir ( Nobile ve Johnson, 2015 ).

      Gıda işleme ve sağlık bakım ortamlarında biyofilmlerin yok edilmesi için çeşitli yaklaşımlar incelenmiştir. Bunlar, sentetik ve doğal olarak türetilmiş antimikrobiyal ajanların yanı sıra enerji bazlı dezenfeksiyonu içerir ( Miquel ve diğerleri, 2016 ). Geleneksel dezenfektanlar, istenmeyen memeli ve ekolojik toksisiteler gösterebilen sert kimyasal maddelerdir ( Christen ve diğerleri, 2017 ). Geleneksel antiseptik ajanlar da memeli toksisitelerini göstermiştir ( Kim ve diğerleri, 2017 ). Sıklıkla doğal olarak elde edilen antibiyotikler, düşük toksisiteleri nedeniyle bu ortamlarda çekici çözümler olmuştur. Bununla birlikte, antibiyotiklerin yaygın kullanımı, antibiyotiğe dirençli (çoklu ilaca dirençli olanlar dahil) organizmaların gelişmesine yol açmıştır.Hastalık Kontrol ve Önleme Merkezleri, 2013 ). Biyofilmler, antibiyotiklerin difüzyonunu bağlayabilen veya başka şekilde kısıtlayabilen hücre dışı matris polisakkaritleri nedeniyle kısmen antibiyotiklerin penetrasyonuna direnç gösterir. Biyofilm fenotipindeki hücreler, aynı zamanda, onları antibiyotiklere daha az duyarlı hale getiren değişmiş metabolik ve diğer davranışlar sergileyebilir ( Van Acker ve diğerleri, 2014 ). Ek olarak, antibiyotiğe dirençli biyofilmlerin artan prevalansı ( Centers for Disease Control and Prevention, 2013) antibiyotik tedavilerinin etkinliğini bozar. Mantar biyofilmleri, hücre dışı matrisleri tarafından filtrasyon ve bağlanma nedeniyle geleneksel antifungal terapötiklere benzer şekilde dirençli olabilir ve onları antifungal kaynaklı oksidatif streslerden koruyan akış pompaları ve diğer biyofilm fenotipine özgü mekanizmalar yoluyla antifungal duyarlılığı daha da azaltabilir ( Van Acker ve ark . ., 2014). Biyofilmlerin antibiyotiklere ve mantar önleyicilere karşı artan direncinin adaptasyonu ve devam eden evrimi nedeniyle, antibiyotik direncini ortaya çıkarmadan mikrobiyal biyofilmleri etkili bir şekilde yok edebilen gelişmiş antibiyotik olmayan bileşimlere önemli bir ihtiyaç vardır. Dar bir organizma yelpazesine karşı oldukça aktif olan ajanlar, daha zayıf aktiviteye sahip oldukları organizmalar tarafından biyofilm oluşumunu seçebilirler. Optimal biyofilm dezenfeksiyon teknolojileri bu nedenle düşük maliyetli olacak, minimum sindirim, topikal ve parenteral toksisiteler sunacak ve Gram pozitif, Gram negatif ve mantar patojenleri dahil olmak üzere geniş bir patojenik mikrop spektrumunu hızla ortadan kaldırabilecektir.

      Kaprilik asit (CAP), hindistancevizi yağında ve memeli (insan dahil) anne sütünde doğal olarak bulunan orta zincirli bir yağ asididir ( Jensen ve diğerleri, 1990 ; Marina ve diğerleri, 2009 ). CAP, bazı intravenöz olarak uygulanan total parenteral beslenme formülasyonlarının bir bileşeni olmuştur ( Wanten ve Calder, 2007 ; Rayyan ve diğerleri, 2012 ). Protonlanmış CAP için antimikrobiyal etkiler rapor edilmiştir - büyük olasılıkla mikrobiyal hücre zarlarının lipofilik bölümleriyle etkileşime girme ve hücre zarı bütünlüğünü bozma yeteneği nedeniyle ( Pohl ve diğerleri, 2011 ). CAP'nin pK'si yaklaşık 4,8 olarak rapor edilmiştir ( CRC, 2004–2005). Protonlanmış durumda, CAP küçük, yüksüz bir lipofilik molekül olduğundan, özellikleri biyofilmin hızlı penetrasyonunu ve gömülü mikrobiyal hücre zarlarına interkalasyonu teşvik eder.

      Poligalakturonik (PG) asit, sebze ve meyve hücre duvarlarında bulunan yapısal bir biyopolimer (polisakkarit) olan pektinden doğal olarak elde edilir. Doğal olarak türetilen PG kısmen esterleştirilir (genellikle metoksilatlanır), genellikle turunçgil kabuğundan veya elma posasından türetilir ve omurgasında diğer şeker moleküllerinin küçük bileşenlerini içerebilir ( Sriamornsak, 2013 ). PG'nin pK'si, esterleşme derecesine göre değişir ancak yaklaşık 3.5 ila 4.1 arasında değişir. pK'nin üzerindeki pH'larda, PG genellikle çözünürdür; bununla birlikte, pK'sının altındaki pH'larda jeller oluşturabilir ( Sriamornsak, 2013 ). Doğal olarak türetilmiş PG'nin moleküler ağırlığı tipik olarak 50 ila 150 KDa arasındadır ( Sriamornsak, 2013 ). PG, hidrokolloid yara pansumanlarında farmasötik bir eksipiyan olarak yaygın olarak kullanılmaktadır (Munarin ve diğerleri, 2012 ) ve antimikrobiyal aktiviteyi desteklediği gösterilmiştir ( Espitia ve diğerleri, 2014 ). Bu özelliklerin ışığında ve PG'nin lipidleri emülsifiye etmede de etkili olduğu gösterildiğinden ( Akhtar ve diğerleri, 2002 ), burada gıda işleme ve tıbbi uygulamalarda biyofilm eradikasyonu için PG ve CAP kombinasyonunun biyouyumluluğunu ve potansiyel sinerjisini inceledik. .

      Malzemeler ve yöntemler
      Mikrobiyal Suşlar
      Testler, yaygın hastane kaynaklı (HAI) ve gıda kaynaklı enfeksiyonları temsil eden yüksek derecede öldürücü Gram-pozitif, Gram-negatif ve maya patojenleri kullanılarak gerçekleştirilmiştir. Test edilen patojenler, metisiline dirençli Staphylococcus aureus (MRSA, MDA 120), çoklu ilaca dirençli (MDR) Pseudomonas aeruginosa (MDA 118), Candida albicans (MDA 117), Escherichia coli (MDA 123) ve Salmonella enteritidis (ATCC 13076) idi. . Test edilen tüm MDA numaralı patojenler, MD Anderson Bulaşıcı Hastalık organizma bankasında saklanan bakteriyemili kanser hastalarının kanından kültürlenen klinik izolatlardır. S. enteritidissuşu bir ATCC standardıydı. Test organizmaları için, gliserol stok triptikaz soya agar + %5 koyun kanı (bakteriler için) veya sabouraud dekstroz agardan (maya için) büyütüldü. Her organizma Muller Hinton Broth'a (MHB) aşılandı ve 0.5 McFarland'a seyreltildi. Test için gerektiği gibi ilave seyreltmeler yapıldı.

      Planktonik Organizmaların İnhibisyonu
      PG ve CAP'nin planktonik organizmalara karşı potansiyel antimikrobiyal aktivitesini değerlendirmek için MIC (PG veya CAP) ve Checkerboard (PG + CAP) testleri yapıldı. MIC'ler, Klinik ve Laboratuvar Standartları Enstitüsü (CLSI) M07 yönergelerine ( CLSI, 2015 ) uygun olarak mikro broth dilüsyonları ile belirlendi.). Yuvarlak tabanlı 96 oyuklu plakalar kullanılarak, hem HAI hem de gıda patojenleri, bağımsız olarak ve çeşitli CAP dilüsyonları ile kombinasyonlarda (dama tahtası) bir dizi PG dilüsyonuna (0, 0.25, 0.5, 0.75 ve %1) maruz bırakıldı. (0, 0.01, 0.02, 0.03, 0.04, ve %0.05). Plakaların çalkalandığı ve inkübasyon sırasında çalkalanmadığı deney setleri yapıldı. MIC, büyüme için görsel puanlama ile belirlendi. Bulanıklığın gözlenmediği en düşük ilaç konsantrasyonuna sahip kuyu, test edilen organizma için MIC'ye karşılık geldi.

      Biyofilm Eradikasyon Testine Kadar Zaman
      Antimikrobiyal ajanlara farklı maruz kalma sürelerinin ardından patojenik biyofilmlerin yok edilmesini test etmek için iyi kurulmuş bir biyofilm kolonizasyon modeli ( Kuhn ve diğerleri, 2002 ) kullanıldı. Kısaca, 1 cm silikon diskler 24 oyuklu düz tabanlı hücre kültürü plakalarına yerleştirildi ve gece boyunca 37°C'de 1 ml insan plazmasına maruz bırakıldı. Biyofilm, zorlama organizma (1 ml 5.5 × 10⁵) ile aşılanarak silikon diskler üzerine kurulmuştur .CFU/ml) ve 37°C'de 24 saat çalkalayarak inkübe edildi. Daha sonra tüm kültür sıvısı çıkarıldı ve diskler, kalan planktonik organizmaları uzaklaştırmak için izotonik steril tuzlu su içinde 30 dakika çalkalanarak yıkandı. Yıkamadan sonra diskler 37°C'de 30 veya 60 dakika bağımsız olarak her testin 1 ml'sine maruz bırakıldı. Maruz kaldıktan sonra, silikon disklerin yüzeyinde kalan herhangi bir biyofilm, 15 dakika boyunca 5 ml izotonik salin içinde sonikasyon diskleri yoluyla biyofilm parçalanarak değerlendirildi. Elde edilen solüsyon seri olarak seyreltildi ve kantitatif olarak Trypticase Soy Agar + %5 koyun kanı (bakteri) veya Sabouraud Dextrose Agar (maya) üzerinde kültürlendi. Biyofilmin tamamen yok edilmesi, tedaviyi takiben hiçbir canlı koloninin geri kazanılmasını gerektirmez. Kontrolden daha az canlı organizmanın geri kazanılması, biyofilmin kısmen yok edildiğini gösterir. Her organizma için her dezenfektan solüsyonu için her zaman noktası altı kopya ile test edildi. Dezenfekte solüsyonlarına maruz kaldıktan sonra hiçbir canlı koloninin geri kazanılmadığı biyofilmlerden eradikasyonun tamamlandığından (hayatta kalan uykuda veya kalıcı hücre yok) emin olmak için, önce biyofilmle kolonize edilmiş diskleri her deneysel solüsyona maruz bırakarak, sonra durulayarak ve ardından transfer ederek yeniden büyüme deneyleri yapıldı. diskleri taze et suyuna alın ve 24 saat daha inkübe edin. 24 saatlik yeniden büyüme aralığının ardından, biyofilmde gömülü kalan herhangi bir organizmanın hala canlı olup olmadığını belirlemek için diskler sonikasyona tabi tutuldu ve yukarıda belirtildiği gibi kültürlendi. Dezenfekte solüsyonlarına maruz kaldıktan sonra hiçbir canlı koloninin geri kazanılmadığı biyofilmlerden eradikasyonun tamamlandığından (hayatta kalan uykuda veya kalıcı hücre yok) emin olmak için, önce biyofilmle kolonize edilmiş diskleri her deneysel solüsyona maruz bırakarak, sonra durulayarak ve ardından transfer ederek yeniden büyüme deneyleri yapıldı. diskleri taze et suyuna alın ve 24 saat daha inkübe edin. 24 saatlik yeniden büyüme aralığının ardından, biyofilmde gömülü kalan herhangi bir organizmanın hala canlı olup olmadığını belirlemek için diskler sonikasyona tabi tutuldu ve yukarıda belirtildiği gibi kültürlendi. Dezenfekte solüsyonlarına maruz kaldıktan sonra hiçbir canlı koloninin geri kazanılmadığı biyofilmlerden eradikasyonun tamamlandığından (hayatta kalan uykuda veya kalıcı hücre yok) emin olmak için, önce biyofilmle kolonize edilmiş diskleri her deneysel solüsyona maruz bırakarak, sonra durulayarak ve ardından transfer ederek yeniden büyüme deneyleri yapıldı. diskleri taze et suyuna alın ve 24 saat daha inkübe edin. 24 saatlik yeniden büyüme aralığının ardından, biyofilmde gömülü kalan herhangi bir organizmanın hala canlı olup olmadığını belirlemek için diskler sonikasyona tabi tutuldu ve yukarıda belirtildiği gibi kültürlendi. daha sonra durulanır ve ardından diskler taze et suyuna aktarılır ve 24 saat daha inkübe edilir. 24 saatlik yeniden büyüme aralığının ardından, biyofilmde gömülü kalan herhangi bir organizmanın hala canlı olup olmadığını belirlemek için diskler sonikasyona tabi tutuldu ve yukarıda belirtildiği gibi kültürlendi. daha sonra durulanır ve ardından diskler taze et suyuna aktarılır ve 24 saat daha inkübe edilir. 24 saatlik yeniden büyüme aralığının ardından, biyofilmde gömülü kalan herhangi bir organizmanın hala canlı olup olmadığını belirlemek için diskler sonikasyona tabi tutuldu ve yukarıda belirtildiği gibi kültürlendi.

      %1 PG (Sigma-Aldrich, St. Louis, MO, Amerika Birleşik Devletleri, <%15 esterlenmiş) + %0.1 veya %0.4 CAP (Sigma-Aldrich, St. Louis, MO, Amerika Birleşik Devletleri) içeren antimikrobiyal solüsyonlar hazırlandı. %0.1 CAP, CAP için rapor edilen sulu çözünürlük sınırına yakın olduğu için seçildi ( Hoerr ve diğerleri, 1946 ). Lipidler için pektinlerin emülsifiye edici kapasitesinin %40 veya daha fazla olduğu bildirilmiştir ( Liang et al., 2015 ).%0,4 CAP, CAP'nin çözünürlük sınırının oldukça üzerinde olduğundan ve bu nedenle mikroplara sunulan etkin CAP konsantrasyonunu artırma potansiyeli sunduğundan, test için %1 PG ve %0.4 CAP (PG konsantrasyonunun %40'ı) seçilmiştir. MHB, %1 PG, %0.1 CAP ve %0.4 CAP kontrol solüsyonları olarak dahil edildi. Tutarlılık için, MBH kontrolü de dahil olmak üzere tüm test çözeltilerinin pH'ı, gerektiğinde sodyum hidroksit veya hidroklorik asit ile pH 4,25'te tutuldu.

      Memeli Sitotoksisite Testi
      Memeli sitotoksisite testi, de Gomes ve ark.'nın dolaylı yöntemi izlenerek yürütülmüştür . (2011) burada L929 fare fibroblastları, 24 saat boyunca %2 ila %0.5'lik bir konsantrasyon aralığında tehdit kompozisyonlarının özlerine maruz bırakılır ( de Gomes ve diğerleri, 2011 ). Maruziyetten sonra, canlılık Alamar Blue Assay ( O'Brien ve diğerleri, 2000 ) ve Trypan Blue Exclusion boyama tahlili ( Strober, 2015 ) kullanılarak test edildi. L929 fibroblastları (ATCC #CCL-1; ATCC, Manassas, VA, Amerika Birleşik Devletleri), %10 ısıyla inaktive edilmiş fetal sığır serumu ile takviye edilmiş Dulbecco'nun modifiye Eagle ortamında (DMEM; Corning Cell Grow, Manassas, VA, Amerika Birleşik Devletleri) büyütüldü ( FBS; Sigma-Aldrich, St. Louis, MO, Amerika Birleşik Devletleri) %5 CO2 içinde(h/v) 37°C'de. Fibroblastların tohumlama yoğunluğu, Alamar Blue tahlili için 96 oyuklu düz tabanlı kültür plakalarında 4.5 x 10³ hücre/kuyu ve canlı ölü boyama için 25 cm2 kültür şişelerinde 2.8 x 10⁵ hücre idi . De Gomes ve ark.'nın dolaylı maruz kalma yöntemini takiben . (2011) , büyüme yaklaşık %60'a ulaştığında birleşme hücreleri, 24 saat boyunca DMEM'de % 1 PG + % 0.4 CAP + %10 FBS'nin % 2, 1 ve % 0,5 özütlerine maruz bırakıldı. Kontrol (muamele edilmemiş) hücreler, ilave dezenfektan ajanlar olmadan DMEM + %10 FBS içinde inkübe edildi. Maruziyetlerden sonra hücre canlılığı ve toksisite değerlendirildi. Tüm deneyler üç kopya halinde yapıldı.

      Alamar Blue tahlili (Life Technologies, Corp., Carlsbad, CA, Amerika Birleşik Devletleri), PG + CAP'ye maruz kalmayı takiben fibroblastların metabolik aktivitesinin duyarlılığını değerlendirmek için kullanıldı. Bu tahlil, hücrelerdeki enzim aktivitesine yanıt olarak resazurini azaltarak yüksek düzeyde floresan resorufin üretimine dayalı genel metabolik aktiviteyi ölçer ( O'Brien ve diğerleri, 2000 ). Sitotoksik bileşikler, fibroblastların metabolik olarak resazurini resorufine indirgeme yeteneklerini kaybetmelerine neden olarak floresan sinyali üretmezler. PG + CAP solüsyonlarına 24 saat maruz kaldıktan sonra, ortam 100 ul Hank's Balanced Salt Solution (HBSS; Corning Cell Grow, Manassas, VA, Amerika Birleşik Devletleri) + %10 Alamar Blue reaktifi ile değiştirildi ve 4 saat boyunca %5 CO2 içinde inkübe edildi. 2(h/v) 37°C'de. Absorbans, bir mikroplaka okuyucu spektrofotometre kullanılarak 570 nm'de belirlendi. Hücre canlılığı (absorbans), tedavi edilen ve edilmeyen kontrol hücreleri arasında karşılaştırıldı. Kontrol (işlenmemiş) hücreler, DMEM + %10 FBS içinde inkübe edildi ve metabolik aktiviteleri, yukarıda açıklanan Alamar Blue tahlili ile değerlendirildi. Tüm deneyler üç kopya halinde yapıldı. Sonuçlar, işlenmemiş kontrollere normalize edilmiş floresan sinyalinin yüzdesi olarak ifade edilir.

      Hücre süspansiyonunda bulunan canlı hücrelerin sayısını belirlemek için hücre boyama testi olarak Trypan Blue dışlama testi kullanıldı ( Strober, 2015 ). Sağlam zarlara sahip canlı hücreler, Trypan Blue boyasını dışlama yeteneğine sahipken, ölü hücreler bunu yapmaz. Bu nedenle, canlı hücreler berrak bir sitoplazmaya sahipken, ölü hücreler mavi sitoplazma ile boyanmıştır ( Strober, 2015 ). PG + CAP'ye 24 saat maruz kaldıktan sonra hücreler, herhangi bir anti-tripsin serum proteinini çıkarmak için HBSS ile yıkandı ve %0.05 tripsin EDTA (Corning Cell Grow, Manassas, VA, Amerika Birleşik Devletleri) ile kültür şişesinden toplandı. Ayrıldıktan sonra DMEM + %10 FBS eklendi ve hücreler 200 x g'de peletlendi7 dk. Süpernatant döküldü ve hücreler 2 ml HBSS içinde yeniden süspanse edildi. On mikrolitre hücre süspansiyonu alikuotları, 10 ul %0.4 Tripan Mavisi (Sigma-Aldrich, St. Louis, MO, Amerika Birleşik Devletleri) ile boyandı. Canlı ve ölü hücreler hemasitometre ile sayıldı. Kontrol, işlenmemiş hücreler, DMEM + %10 FBS içinde inkübe edildi ve canlılık, yukarıda açıklanan Trypan Blue dışlama testi kullanılarak değerlendirildi. Tüm deneyler üç kopya halinde yapıldı. Sonuçlar, süspansiyondaki canlı hücre yüzdesi olarak ifade edildi.

      İstatistiksel Test
      Test edilen solüsyonların herhangi birinde medyanlarda herhangi bir anlamlı farklılık olup olmadığını belirlemek için Kruskal-Wallis testi kullanıldı. Ardından , %30 veya 60 dakikalık zaman noktalarında %1 PG + %0.4 CAP, bireysel bileşenler ve MHB kontrolünün performansını karşılaştırmak için Mann-Whitney U testi kullanılarak ikili karşılaştırmalar yapıldı . Tüm karşılaştırmalar, 0,5 alfa seviyesi ile iki taraflıydı. 0.05'ten küçük bir p- değeri ( p < 0.05) istatistiksel olarak anlamlı kabul edildi.

      Git: Sonuçlar
      Planktonik Organizmaların İnhibisyonu
      CAP ve PG'nin ayrı bileşenlerinin yanı sıra kombinasyonlar için tüm MIC'ler Tabloda sunulmaktadır.​Tablo 11. Plakalar çalkalandığında veya çalkalanmadığında hiçbir fark görülmedi. MRSA için inhibisyon, %0.5'in (MIC'si) üzerindeki PG konsantrasyonlarında meydana geldi. MRSA'nın büyümesi, %0.03 CAP'de (MIC'si) tamamen inhibe edildi. %0.01 CAP'de, kombinasyon halinde %0.25 PG, MRSA büyümesini engelleyebildi. P. aeruginosa için , %0.75'in üzerindeki PG konsantrasyonlarında inhibisyon meydana geldi. %0.05 veya daha düşük CAP konsantrasyonları, P. aeruginosa'yı inhibe etmedi . %0.05 CAP'de, kombinasyon halinde %0.25'lik bir PG konsantrasyonu, P. aeruginosa büyümesini engelleyebildi . CA , %1 veya daha düşük PG konsantrasyonlarında veya %0.05 veya daha düşük CAP konsantrasyonlarında inhibe edilmedi. Bununla birlikte, %0.01 CAP'de kombinasyon halinde %0.25'lik bir PG konsantrasyonu,C. ablicans . E. coli için , PG'nin MIC değeri %1 idi. %0.05 veya daha az CAP konsantrasyonları, E. coli'nin büyümesini engellemedi . %0.02'lik bir CAP konsantrasyonunda, kombinasyon halinde %0.75 PG, E.coli'nin büyümesini engelleyebildi ve benzer şekilde, %0.04'lük bir CAP konsantrasyonunda, kombinasyon halinde %0.5 PG, E.coli'nin büyümesini engelleyebildi . S. enteritidis , %1 veya daha düşük konsantrasyonlarda PG tarafından inhibe edilmedi ve büyümesi %0.05 veya daha düşük CAP konsantrasyonlarında inhibe edilmedi. %0.01 CAP'de, kombinasyon halinde %0.75 PG, S. enteritidis'in büyümesini engelleyebildi ve benzer şekilde, %0.02 CAP'de, %0.5 PG kombinasyon halinde S. enteritidis'in büyümesini engelleyebildi . tablo 1


      Kaprilik asit, poligalakturonik asit ve kombinasyonlarının minimum inhibitör konsantrasyonu (MIC).
      MRSA %0.5 %0.03 %0.25/0.01
      not aerguinosa %0.75 >0.05% %0.25/0.05
      c. albicans >%1 >0.05% %0.25/0.01
      E. koli %1 >0.05% %0.75/0.02
      %0.5/0.04
      S. enteriditler >%1 >0.05% %0.75/0.01
      %0.5/0.02
      Ayrı bir pencerede aç
      MIC'ler, CSLI (Klinik ve Laboratuvar Standartları Enstitüsü) M07 yönergelerine uygun olarak mikro et suyu seyreltmeleriyle belirlendi. Patojenler, bağımsız olarak ve CAP (0, 0.01, 0.02, 0.03, 0.04 ve %0.05). MIC, büyüme için görsel puanlama ile belirlendi (“>” şundan büyük anlamına gelir) .

      Biyofilm Eradikasyonu Zamanı
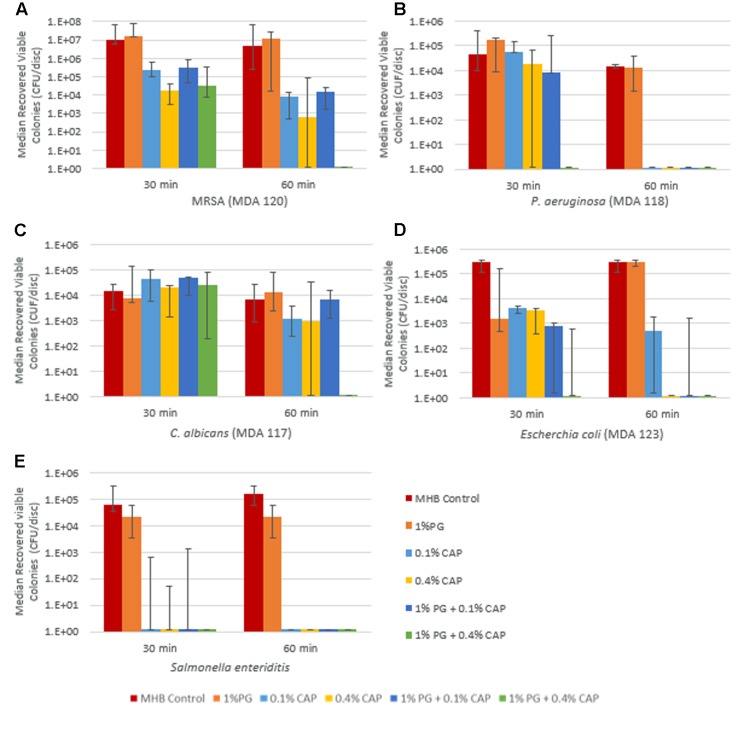
      Et suyu kontrolü, %1 PG, %0,1 CAP, %0,4 CAP ve %1 PG + %0,1 CAP ve %1 PG + %0,4 CAP kombinasyonları için biyofilm eradikasyon testi sonuçları Şekillerde sunulmaktadır.1A–Esırasıyla MRSA, P. aeruginosa , C. albicans , E. coli ve S. enteritidis için sunulan "Sonuçlar" bölümü, altı kopya için aralık çubuklarıyla birlikte silikon disk başına medyan koloni oluşturan birimlerdir. %1 PG + %0.4 CAP'nin biyofilmi yok etmedeki etkinliği MRSA (60 dakika), P. aeruginosa (30 dakika) ve C. albicans (60 dakika) için MHB kontrolüne göre istatistiksel olarak anlamlıydı ( tüm organizmalar için p = 0.002) ve yalnızca %1 PG ( sırasıyla p = 0,002, p = 0,015 ve p = 0,002). Tek başına %0,4 CAP ile karşılaştırıldığında, %1 PG + %0,4 CAP, karşılaştırıldığında önemli düşüşler gösterdi.30 dakikada P. aeruginosa ( p = 0.041) ve 60 dakikada C. albicans ( p = 0.015). MRSA için %1 PG + %0,4 CAP biyofilmi tamamen yok etti (canlı koloni geri kazanılmadı) oysa tek başına %0,4 CAP disk başına 6,25 × 10² CFU medyan büyümeye sahipti , ancak bu fark istatistiksel anlamlılığa ulaşmadı ( p = 0.18) . PG + %0,4 CAP'nin yüzde biri, 30 dakika içinde E. coli'yi tamamen yok etti (hiçbir canlı koloni geri kazanılmadı), %0,4 CAP disk başına ortalama 3,55 × 10³ CFU büyüme gösterdi ; ancak, bu fark da istatistiksel anlamlılığa ulaşmadı ( p= 0.2). Hem tek başına CAP hem de PG + CAP kombinasyonu , maruziyetten sonraki 30 dakika içinde S. enteritidis biyofilminin yok edilmesinde oldukça etkiliydi . Biyofilm yok etme tahlilinde hiçbir canlı koloninin geri kazanılmadığı hiçbir solüsyon için yeniden büyüme olmadı. Bu, biyofilm eradikasyon tahlilinde hiçbir canlı koloni geri kazanılmadığında eradikasyonun gerçekten tamamlandığını doğruladı.

      Ayrı bir pencerede aç
      ŞEKİL 1
      Temsili enfeksiyöz patojenlerden biyofilmlerin poligalakturonik asit (PG) ve kaprilik ile MRSA (A) , P. aeruginosa (B) , C. albicans (C) , E. coli (D) ve S. enteritidis (E) sinerjik eradikasyonu asit (CAP) kombinasyonları. Tüm rakamlar, aralık çubukları ile medyan geri kazanılmış canlı koloniler olarak sunulur.

      Sitotoksisite Testi
      Figür​Şekil 22%1 PG + %0.4 CAP'nin %2, 1 ve %0.5 ekstraktlarına maruz kalan fibroblastların yanı sıra kontrol fibroblastları için Alamar Blue sitotoksisite testinin sonuçlarını sunar. Sonuçlar, kontrole göre yüzde floresan sinyali olarak ifade edilir. Muamele edilmemiş kontrol hücreleri ile karşılaştırıldığında, grupların herhangi biri arasında metabolik aktivitede anlamlı bir farklılık ( p > 0.31) yoktu. Üç kopyanın her birinde 1.5–2.0 x 10⁶ hücre saymaya dayalı olarak , Trypan Blue hücre dışlama deneyindeki kontrol, ortalama %96.9 canlı hücre (temiz hücreler) verdi. %1 PG + %0.4 CAP'nin %2 özütü, ortalama %97.6 canlı hücre verdi ( Tablo​Tablo 22). Gruplar arasında hücre canlılığı açısından anlamlı bir fark yoktu ( p = 0.41).

      Ayrı bir pencerede aç
      ŞEKİL 2
      Alamar Blue metabolik aktivite testi ile in vitro sitotoksisite. L-929 fibroblastları, 24 saat boyunca PG + CAP özleri ile işlendi. Hücre metabolik aktivitesi, Alamar Blue tahlili ile değerlendirildi. Sonuçlar, aralık çubukları ile işlenmemiş kontrol hücrelerine göre medyan yüzde metabolik aktivite olarak ifade edilir. Tablo 2


      Trypan Blue boyama ile hücre canlılığının in vitro sitotoksisite değerlendirmesi: L-929 Fibroblastlar, 24 saat boyunca PG + CAP özleri ile işlendi.
      Ortalama Canlı Hücreler ± standart sapma 1.84 ± 0.18 × 10 6 1,57 ± 0,11 × 10 6
      Ortalama Ölü Hücreler ± standart sapma 6.00 ± 2.12 × 10 4 3,83 ± 0,60 × 10 4
      Uygulanabilir % %96.89 %97.62
      Ayrı bir pencerede aç
      Hücre canlılığı, Trypan Blue dışlama tahlili ile değerlendirildi. Sonuçlar, işlenmemiş kontrol hücrelerine göre canlı hücre yüzdesi olarak ifade edilir .

      Tartışma
      Şekilde gösterildiği
      gibi​Şekil 11, hem %0,1 hem de %0,4 konsantrasyonlarında protonlanmış CAP, 60 dakikalık inkübasyondan sonra biyofilmlerdeki canlı MRSA ve C. albicans organizmalarında azalma gösterdi, ancak tam eradikasyon yalnızca 60 dakika içinde P. aeruginosa biyofilmlerine karşı görüldü. Daha önce, CAP'nin, P. aeruginosa ve MRSA dahil olmak üzere planktonik Gram pozitif ve Gram negatif organizmalara karşı antimikrobiyal aktiviteye sahip olduğu bildirilmişti ( Kim ve Rhee, 2016 ), ancak biyofilme karşı etkinliği değerlendirilmedi. E. coli dışında ( Şekil​Şekil 22), PG yokken CAP konsantrasyonunun %0,1'den %0,4'e çıkarılmasının biyofilm eradikasyonu üzerinde önemli bir etkisi yoktu. Bu, CAP'nin yaklaşık %0.07'lik rapor edilen sulu çözünürlük limiti ile tutarlıdır ( Hoerr ve diğerleri, 1946 ), bu nedenle CAP konsantrasyonu doygunluğa ulaştığında, çözünmeyen CAP'nin mevcut olmasından kaynaklanan biyofilm eradikasyonu üzerinde çok az etki olmuştur. PG tek başına planktonik P. aeruginosa , MRSA ve E. coli'ye karşı inhibitör aktivite gösterse de, P. aeruginosa , E. coli'ye karşı kayda değer bir antimikrobiyal etki yoktu .ve MRSA biyofilmleri. Bu, biyofilmler içindeki gömülü mikrobiyal hücrelere erişimi hücre dışı biyofilm matris polisakaritler ile etkileşimler tarafından azaltılmış olabilen PG'nin moleküler boyutunun ve elektrostatik yükünün bir sonucu olabilir. Tek başına PG, planktonik C. albicans ve S. enteritidis veya C. albicans ve S. enteritidis'in biyofilmlerine karşı sınırlı etkinliğe sahipti .

      Bu çalışmada, MRSA (60 dakikada), P. aeruginosa (30 dakikada), E. coli'ye (30 dakikada) karşı %1 PG + %0.4 CAP kombinasyonu ile biyofilm eradikasyonuna kadar geçen sürede sinerjik bir azalma görülmüştür. ve C. albicans (60 dakikada). Yüzde bir PG + %0.1 CAP, E. coli'ye karşı biyofilm eradikasyonuna kadar geçen sürede sinerjistik azalma gösterdi (60 dakika). PG + CAP kombinasyonları ayrıca S. enteritidis biyofilmlerine karşı oldukça etkiliydi, ancak tek başına CAP da S. enteritidis'e karşı oldukça etkiliydi.test edilen maruziyetlerde (30 ve 60 dakika) biyofilmler. Kontroller için broth, antimikrobiyal solüsyonlarla aynı pH'a (4.25) ayarlandığından, antimikrobiyal etkiler solüsyon asitliğinden kaynaklanmadı. PG + CAP kombinasyonlarının S. enteritidis'e karşı sinerjisinin olması mümkündür.biyofilmler, bu çalışmada test edilenlerden daha kısa maruz kalma sürelerinde mevcuttu. PG ile kombinasyon halinde %0.4 CAP ile görülen gelişmiş sinerji için bir hipotez, CAP'nin görünür çözünürlüğünün PG + CAP kombinasyonunda arttırıldığı ve hem CAP hem de PG'nin biyofilmler içindeki biyoyararlanımının birleştirildiğinde önemli ölçüde arttığı olabilir. %0.4 konsantrasyonda, tek başına CAP (PG'siz) faz ayrımı veya karışmazlığın gözle görülür işaretleri gösterdi ve 25°C'de bildirilen %0.07-0.08 sulu CAP çözünürlük sınırının oldukça üzerindeydi ( Hoerr ve diğerleri, 1946 ). Bu aynı zamanda Şekilde %0,1 ve % 0,4'te tek başına CAP arasında görülen antimikrobiyal aktivitedeki küçük farklılıklarla da tutarlıdır.
      ​Şekil 11burada çözünür CAP doymuş olabilir. Bir optik mikroskop aracılığıyla %1 PG + %0.4 CAP'nin gözlemleri, PG'nin lipid emülsifiye edici özelliklerine ilişkin önceki raporlarla tutarlı olarak ince emülsiyon haline getirilmiş yağ damlacıklarının varlığını gösterdi ( Akhtar ve diğerleri, 2002 ). PG ve CAP kombinasyonları için planktonik veriler, biyofilmler içinde CAP ve PG'nin biyoyararlanımını artırmanın ötesinde kombinasyon için antimikrobiyal sinerjinin ikili mekanizmaları için ek bir hipotezi desteklemektedir. Protonlanmış CAP'nin hücre zarlarını doğrudan bozduğu bilinmesine rağmen ( Pohl ve diğerleri, 2011 ), PG, önemli metal iyonlarını ve katyonik kalıntılı molekülleri bağlama veya çökeltme yeteneğine sahiptir ( Espitia ve diğerleri, 2014).) proteinler ve peptitler gibi. Bu aktiviteler, özellikle hücre zarları aynı anda stres altındayken ve protonlanmış CAP'ın etkisi ile daha gözenekli hale getirildiğinde, mikrobiyal çoğalmayı ve hayatta kalmayı engeller.

      Kaprilik asit, doğal olarak oluşan bir yağ asididir. İyonize (protonsuzlaştırılmış) durumda (nötr pH), kaprilat iyonu, memelilerde iyi kurulmuş bir metabolik profile sahip bir besindir (
      Hirabara ve diğerleri, 2006 ). pH 4,8'in üzerine çıktığında CAP iyonize olabilir ( CRC, 2004–2005 ), bu nedenle çoğu fizyolojik ortamda CAP hızla iyi huylu bir besine iyonize olur. Topikal bir formülasyonda, antimikrobiyal aktiviteyi koruyan protonlanmış CAP, pH 4.8'in altında tutularak mevcut olabilir. Bu, insan derisinde görülen doğal pH aralığı içindedir ( Lambers ve diğerleri, 2006 ). Vajinal kanal ( Lang, 1955 ) ve sindirim sistemi ( Evans ve diğerleri, 1988 ) gibi ek epitelyal ortamlar) ayrıca doğal olarak asidik pH'ları korur. Dermal yaraların asidik pH'larda iyileştirilmiş iyileşme gösterdiği bildirilmiştir ( Schreml ve diğerleri, 2010 ). pH'ı 3,2-4,2 ( Pieper, 2009 ) olan bal, yaralara doğrudan uygulanmış ve yaraları tedavi etmek için kullanılmıştır. Bazı klinik araştırmalar, balın topikal uygulamasıyla iyileşmenin arttığını bildirmiştir ve asidik, tıbbi dereceli balın yaralarda güvenli topikal kullanımı tutarlı bir şekilde rapor edilmiştir ( Lee ve diğerleri, 2011 ). Yara yataklarında TKP bulunmasının da yara iyileşmesine yardımcı olduğu bildirilmiştir ( Pieper ve Caliri, 2003 ; Srivastava ve Durgaprasad, 2008) .). pK'si nedeniyle PG, doğal olarak bal ile aynı aralıkta bir pH'ı korur. PG, nemli, asidik bir ortamı koruma ve bakteriyel bir bariyer sağlama gibi bildirilen faydaları ile hidrokolloid yara pansumanlarında yaygın olarak kullanılmaktadır ve çeşitli ticari yara iyileştirme levha ve macun ürünlerinde bulunmaktadır ( Munarin ve diğerleri, 2012 ).

      Çözüm
      PG ve CAP kombinasyonlarının, temsili Gram-pozitif, Gram-negatif ve mantar biyofilmlerini 60 dakika içinde hızla yok edebildiğini bulduk. Ayrıca kombinasyonun memeli fibroblastlarında sitotoksik bir tepkiye neden olmadığını bulduk. Bu, ayrı ayrı bileşenlerin yara iyileştirme ve beslenme uygulamalarında önceki güvenli kullanımına ilişkin geçmişe ek olarak, kombinasyonun topikal ve gıda dezenfeksiyonu kullanımları için uygun olması gerektiğini düşündürmektedir. Sinerjik, antibiyotik olmayan, antimikrobiyal kombinasyon, hem güvenliğini hem de etkinliğini kanıtlamak için daha fazla in vivo test gerektirir.

      Yazar Katkıları
      JR, RR ve IR çalışmayı tasarladı. RR ve NV-C planktonik, biyofilm ve sitotoksisite tahlilleri gerçekleştirdi. JR, RR, NV-C, A-MC, RH ve IR verileri gözden geçirdi ve analiz etti ve sonuçlara katkıda bulundu. Makaleyi JR ve RR yazdı. NV-C, A-MC, RH ve IR makaleyi düzenledi. Tüm yazarlar, nihai makaleyi okudu, yorumladı ve onayladı.


      Çıkar Çatışması Beyanı
      Yazarlar, araştırmanın potansiyel bir çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişkinin yokluğunda gerçekleştirildiğini beyan eder.

      Referanslar
      • Akhtar M., Dickinson E., Mazoyer J., Langendorff V. (2002). Depolimerize pektinin emülsiyon stabilize edici özellikleri. Gıda Hidrokol. 16 249–256. 10.1016/S0268-005X(01)00095-9 [ CrossRef ] [ Google Akademik ]
      • Hastalık Kontrol ve Önleme Merkezleri (2013). Amerika Birleşik Devletleri'nde Antibiyotik Direnci Tehditleri, 2013. Atlanta, GA: Hastalık Kontrol ve Önleme Merkezleri. [ Google Akademik ]
      • Christen V., Faltermann S., Brun NR, Kunz PY, Fent K. (2017). Biyosidal dezenfektanların (kuaterner amonyak, glutaraldehit, poli(heksametilen biguanid) hidroklorür PHMB) ve bunların karışımlarının in vitro ve zebra balığı eleuthero-embriyolarında sitotoksisite ve moleküler etkileri. bilim Toplam Çevre. 586 1204–1218. 10.1016/j.scitotenv.2017.02.114 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • CLSI (2015). M07-A10 - Aerobik Olarak Büyüyen Bakteriler İçin Test Edilen Antimikrobiyal Duyarlılık Seyreltme Yöntemleri; Onaylı Standart 10th Edn Wayne, PA: CLSI. [ Google Akademik ]
      • Costerton JW, Stewart PS, Greenberg EP (1999). Bakteriyel biyofilmler: Kalıcı enfeksiyonların yaygın bir nedeni. Bilim 284 1318-1322. 10.1126/science.284.5418.1318 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • ÇHS (2004–2005). Kimya ve Fizik El Kitabı. New York, NY: CRC Basın. [ Google Akademik ]
      • de Gomes PS, Figueiral MH, Fernandes MH, Scully C. (2011). Protez yapıştırıcılarının sitotoksisitesi. klinik. Sözlü Araştırma. 15 885-893. 10.1007/s00784-010-0464-0 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Donlan RM, Costerton JW (2002). Biyofilmler: klinik olarak ilgili mikroorganizmaların hayatta kalma mekanizmaları. klinik. Mikrobiyol. Rev. 15 167–193. 10.1128/CMR.15.2.167-193.2002 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Espitia P., Du W., Avena-Bustillos R., Soares N., McHugh T. (2014). Pektinden yenilebilir filmler: fiziksel-mekanik ve antimikrobiyal özellikler - Bir inceleme. Gıda Hidrokol. 35 287-296. 10.1016/j.foodhyd.2013.06.005 [ CrossRef ] [ Google Akademik ]
      • Evans DF, Pye G., Bramley R., Clark AG, Dyson TJ, Hardcastle JD (1988). Normal ayaktan insan deneklerde gastrointestinal pH profillerinin ölçümü. Bağırsak 29 1035-1041. 10.1136/gut.29.8.1035 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Hirabara SM, Silveira LR, Alberici LC, Leandro CV, Lambertucci RH, Polimeno GC, et al. (2006). Yağ asitlerinin iskelet kasında metabolizma ve mitokondriyal eşleşme üzerindeki akut etkisi. Biyokimya. Biyofiz. Açta 1757 57-66. 10.1016/j.bbabio.2005.11.007 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Hoerr CW, Sedgwick RS, Ralston AW (1946). Normal doymuş yağ asitlerinin çözünürlükleri. J. Org. Kimya 11 603-609. 10.1021/jo01175a025 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • James GA, Swogger E., Wolcott R., Pulcini E., Secor P., Sestrich J., et al. (2008). Kronik yaralarda biyofilmler. Yara Onarımı. Regen. 16 37-44. 10.1111/j.1524-475X.2007.00321.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Jensen RG, Ferris AM, Lammi-Keefe CJ, Henderson RA (1990). Sığır ve insan sütlerinin lipidleri: bir karşılaştırma. J. Süt Bilimi. 73 223–240. 10.3168/jds.S0022-0302(90)78666-3 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Kim BS, Ott V., Boecker AH, Stromps JP, Paul NE, Alharbi Z., et al. (2017). Antiseptiklerin yağ kaynaklı kök hücreler üzerindeki etkisi. Plast Rekonstr. cerrah. 139 625-637. 10.1097/prs.0000000000003125 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Kim SA, Rhee MS (2016). Tüketici antiseptiklerinde aktif bir antiseptik bileşen olarak potansiyel uygulama için kaprilik asidin antibakteriyel aktivitesi. Int. J. Antimikrobiyal. Ajanlar 48 765-767. 10.1016/j.ijantimicag.2016.09.002 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Kuhn DM, George T., Chandra J., Mukherjee PK, Ghannoum MA (2002). Candida biyofilmlerinin antifungal duyarlılığı : amfoterisin B lipid formülasyonlarının ve ekinokandinlerin benzersiz etkinliği. Antimikrobiyal. Ajanlar Chemother. 46 1773-1780. 10.1128/AAC.46.6.1773-1780.2002 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Lambers H., Piessens S., Bloem A., Pronk H., Finkel P. (2006). Doğal cilt yüzeyi pH'ı ortalama olarak 5'in altındadır ve bu, yerleşik florası için faydalıdır. Int. J. Kozmet. bilim 28 359-370. 10.1111/j.1467-2494.2006.00344.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Lang WR (1955). Vajinal asitlik ve pH; bir inceleme. Obstet. Jinekol. hayatta kal. 10 546–560. 10.1097/00006254-195508000-00009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Lee DS, Sinno S., Khachemoune A. (2011). Bal ve yara iyileşmesi: genel bakış. Ben. J. Clin. Dermatol. 12 181–190. 10.2165/11538930-000000000-00000 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Liang R.-H., Wang L.-H., Chen J., Liu W., Liu C.-M. (2015). Alkillenmiş pektin: sentez, karakterizasyon, viskozite ve emülsifiye edici özellikler. Gıda Hidrokol. 50 65-73. 10.1016/j.foodhyd.2015.04.007 [ CrossRef ] [ Google Akademik ]
      • Magill SS, Edwards JR, Bamberg W., Beldavs ZG, Dumyati G., Kainer MA, et al. (2014). Sağlık bakımıyla ilişkili enfeksiyonların çok durumlu nokta yaygınlığı araştırması. N. İngilizce J. Med. 370 1198–1208. 10.1056/NEJMoa1306801 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Marina AM, Che Man YB, Nazimah SAH, Amin I. (2009). Sızma hindistan cevizi yağının kimyasal özellikleri. J. Am. Yağ Kimya. Soc. 86 301-307. 10.1007/s11746-009-1351-1 [ CrossRef ] [ Google Akademik ]
      • Miquel S., Lagrafeuille R., Souweine B., Forestier C. (2016). Bir sağlık sorunu olarak anti-biyofilm aktivitesi. Ön. Mikrobiyol. 7 : 592 10.3389/fmicb.2016.00592 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Munarin F., Tanzi MC, Petrini P. (2012). Pektin jellerinin biyomedikal uygulamalarında gelişmeler. Int. J. Biol. Makromol. 51 681–689. 10.1016/j.ijbiomac.2012.07.002 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Ulusal Gelişmekte Olan ve Zoonotik Bulaşıcı Hastalıklar Merkezi ve Gıda Kaynaklı Su Kaynaklı ve Çevresel Hastalıklar Bölümü (2016). Amerika Birleşik Devletleri'nde Gıda Kaynaklı Hastalık Tahminleri. Atlanta, GA: Hastalık Kontrol ve Önleme Merkezleri. [ Google Akademik ]
      • Nobile CJ, Johnson AD (2015). Candida albicans biyofilmleri ve insan hastalığı. Annu. Rev. Mikrobiyol. 69 71-92. 10.1146/annurev-micro-091014-104330 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • O'Brien J., Wilson I., Orton T., Pognan F. (2000). Memeli hücre sitotoksisitesinin değerlendirilmesi için Alamar Blue (resazurin) floresan boyasının araştırılması. Avro. J. Biochem. 267 5421–5426. 10.1046/j.1432-1327.2000.01606.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Pieper B. (2009). Bal bazlı pansumanlar ve yara bakımı: Amerika Birleşik Devletleri'nde bir bakım seçeneği. J. Yara Ostomi Kontinans Hemşireleri. 36 60-66. 10.1097/01.WON.0000345177.58740.7d [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Pieper B., Caliri MH (2003). Geleneksel olmayan yara bakımı: şeker, papaya/papain ve yağ asitlerinin kullanımına ilişkin kanıtların gözden geçirilmesi. J. Yara Ostomi Kontinans Hemşireleri. 30 175-183. 10.1067/mjw.2003.131 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Pohl C., Kock J., Thibane V. (2011). “Antifungal serbest yağ asitleri: Bir Gözden Geçirme”, Mikrobiyal Patojenlere Karşı Bilim: Güncel Araştırma ve Teknolojik Gelişmeleri İletmek ed. Mendez-Vilas A. (Badajoz: Formatex; ) 61–71. [ Google Akademik ]
      • Rayyan M., Devlieger H., Jochum F., Allegaert K. (2012). Soya fasulyesi yağı, zeytinyağı, orta zincirli trigliseritler ve balık yağı karışımı içeren bir lipid emülsiyonu ile parenteral beslenmenin kısa süreli kullanımı: erken doğmuş bebeklerde randomize çift kör bir çalışma. JPEN J. Ebeveyn. Enteral Nutr. 36(Ek 1) 81S–94S. 10.1177/0148607111424411 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Schreml S., Szeimies RM, Karrer S., Heinlin J., Landthaler M., Babilas P. (2010). pH değerinin cilt bütünlüğüne ve kutanöz yara iyileşmesine etkisi. J.Eur. Acad. Dermatol. Venereol. 24 373-378. 10.1111/j.1468-3083.2009.03413.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Sriamornsak P. (2013). Pektin kimyası ve farmasötik kullanımları: bir inceleme. Silpakorn Üniv. J. 3 206-228. [ Google Akademik ]
      • Srivastava P., Durgaprasad S. (2008). Cocos nucifera'nın yanık yara iyileştirici özelliği : bir değerlendirme. Hint J. Pharmacol. 40 144–146. 10.4103/0253-7613.43159 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Strober W. (2015). Hücre canlılığının tripan mavisi dışlama testi. Kör. protokol immünol. 21 A.3B.1–A.3B.2. 10.1002/0471142735.ima03bs111 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Van Acker H., Van Dijck P., Coenye T. (2014). Bakteriyel ve fungal biyofilmlerde antimikrobiyal tolerans ve direncin moleküler mekanizmaları. Trendler Mikrobiyol. 22 326-333. 10.1016/j.tim.2014.02.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Van Houdt R., Michiels CW (2010). Biyofilm oluşumu ve gıda endüstrisi, bakteri dış yüzeyine odaklanıyor. J. Uygulama Mikrobiyol. 109 1117-1131. 10.1111/j.1365-2672.2010.04756.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Wanten GJ, Calder PC (2007). Parenteral lipid emülsiyonları ile bağışıklık modülasyonu. Ben. J. Clin. Nutr. 85 1171-1184. [ PubMed ] [ Google Akademik ]

      Yorum yap


      • #4
        Hi̇ndi̇stan cevi̇zi̇ yaği

        01 Aralık 2021, 11:44

        Hindistan Cevizi Yağı, Doğal Mucize mi?​​

        Hindistan Cevizi Yağı, Coconut Oil
        Bir grup doktor Hindistan cevizi yağındaki antibakteriyel özellikleri vurgulayıp özellikle mantarsal (CANDİDA, BAĞIRSAK MANTARI) hastalıklarla mücadele edenlerin diyetlerine mutlaka eklemeleri gerektiğini savunuyor. Diyabet, kanser, böbrek, karaciğer sorunlarından tutun da Alzheimer ve Parkinson’a kadar pek çok hastalığa olumlu faydalarını savunan da var, yeterli kanıt yoktur deyip burun kıvıran da. Bir yanda bir grup Doktor Hindistan cevizi yağı ve faydalarını ve mucizesini sonuna kadar savunuyor diğer yanda başka bir grup doktor aynı yağı yüksek doymuş yağ oranı yüzünden eleştiriyor ve uzak durun diyor. Gerçek nedir peki? Hangi grubun sözüne kulak vermeliyiz? Hindistan cevizi yağı binlerce yıldır geleneksel tıpta kullanılmakta olan bir yağdır ve batı tıbbında da son 60 yıldır haklı yerini almaya başlamıştır. Son yıllarda yapılan pek çok araştırmalarla, Hindistan cevizi yağının hem besin olarak hem de doğal deva olarak yıldızı parlamaya başlamış ve kullanan insanların olumlu yorumları ile de desteklenmiş, çeşitli araştırmalar sayesinde de bu yıldız kolay kolay sönmeyecek gibidir. Hindistan cevizi yağının faydası ile ilgili sadece ABD’de yayınlanmış 1000’den fazla bilimsel makale var. Lurik Asit, Kaprik Asit, Kaprilik Asit, ve Orta Zincirli Trigliseridlerle ilgili ise 25,000 den fazla makale var.

        Hindistan Cevizi, Coconut;
        Hindistan cevizi yağının temel kimyası 1920 ve 1930’larda keşfedilmeye başlandı. O yıllarda yapılan araştırmalar sonucu görülmüştür ki diğer bütün yağlara kıyasla Hindistan cevizi yağı belirgin biçimde farklılıklar göstermektedir. Hindistan cevizi yağının ağırlıklı olarak orta zincirli yağ asitleri ailesine ait olduğu ve bu asitlerin Orta Zincirli Trigliserid (MCT = Medium Chain Triglycerides) formunda oldukları o yıllarda yapılan araştırmalarla da tespit edilmiştir. (MCT yağların ile ilgili daha detaylı bilgiyi bu linkten bulabilirsiniz.) 1930 ve 1940’larda ise bazı doktorlar Hindistan cevizi yağının diyete eklendiğinde pek çok besin maddesinin emilimini arttırdığını fark etmişlerdir. Bu keşiften sonra araştırmacılar bebek ve çocuklarda besin emilimi eksikliği ve beslenme bozukluklarına karşı Hindistan cevizi yağının kullanımını araştırmaya yönelmişler ve neticede Hindistan cevizi yağı bebek mamalarına kullanılabilecek en uygun yağ olarak kabul edilmiştir. Bebeklerde, diğer besinsel yağlara kıyasla Hindistan cevizi yağı daha hızlı büyüme, kilo alımı ve genel beslenme durumunda iyileşme sağlamıştır 1. Bugün hala daha Hindistan cevizi yağı bebek mamalarında standart gıda maddesi olarak kullanılmaktadır. Günümüzde hastanelerin Yoğun Bakım odalarında ya da yeni doğan mamalarında Hindistan cevizi yağı ya da MCT’ler kullanılmakta ve hastaların iyileşme zamanını kısalıp, genel besin emilimini artmaktadır.2 MCT’lerin sindirilmesindeki farklılık pek çok hastalığın tedavisine ışık tuttuğu için son derece mühimdir. Bu buluşları müteakip 1960 ve 1970’lerde yoğun araştırmalar ve klinik çalışmalar sonucu da Hindistan cevizi yağının tedavi ettiği hastalıklar listesi uzamaya devam etmiştir. Tıkanma Sarılığı-obstructive jaundice3, Kistik fibroz-cystic fibrosis4, kronik bir gastroenterit olantropical sprue5, a-beta-lipoprotenaemia6, Bağırsak lenfangiektazisi -intestinal lymphangiectasia7, Pankreas Yetmezliği, pancreatic insufficiency8, bu hastalıklardan sadece birkaçıdır, ayrıca yine bağırsak ameliyatlarını müteakip iyileşme dönemini hızlandırmakta da son derece olumlu katkısı vardır.9Hindistan cevizi Yağı kan şekerini dengelediği için diyabet vakalarında da olumlu sonuçlar vermektedir. MCT’ler insülin salgılamasını ve hassasiyetini kontrol edebildikleri için diyabetin asıl altında yatan sebepleri de tersine çevirebilmektedir.10Hindistan cevizi yağının çok güçlü anti-kanserojen özellikleri vardır. Kanserli laboratuvar hayvanları Hindistan cevizi yağı ihtiva eden diyetle beslendiklerinde kanserojen etkilerin tamamen terse döndüğü ispat edilmiştir.11Hindistan cevizi yağı alkol, bakteri, uyuşturucu ve kimyasallar gibi toksik maddelerin sebep olduğu karaciğer hastalıklarını önleyebilir, hatta tedavi edebilir.12 Yine vücuttaki, ince bağırsak, kalın bağırsak, böbrekler ve pankreas gibi diğer organlara da aynı olumlu etkileri vardır.13-15

        Hindistan Cevizi, Coconut;
        Kalp hastalıklarının neticesinde kalpte enerji yetmezliği meydana geldiği dolayısıyla oksijen ve besin tedariki iyileştiğinde de kalbin fonksiyonlarının çarpıcı ölçülerde iyileştiği ispat edilmiştir. 16 Hindistan cevizi yağının kalbe dost olması hatta terapatik özellikler taşıdığı kalp hastalıklarının en az olduğu Hindistan cevizi yiyen toplumlarda yapılan araştırmalarla da doğrulanmıştır. 17 KANSER, DİYABET, KOLİT, KARACİĞER RAHATSIZLIKLARI, SAFRA KESESİ RAHATSIZLIKLARI ve DEMANS (BUNAMA, ALZHEİMER) gibi pek çok dejeneratif hastalıklar da yine düzenli Hindistan cevizi tüketen topluluklarda en az rastlanan hastalıklardır. Tüm bunlar rastlantı mıdır yoksa düzenli olarak tükettikleri Hindistan cevizinden midir acaba? Belgelenmiş, ispat edilmiş antimikrobiyal, antioksidant, antiülseröjen, ağrı kesici, mutasyon önleyici, ateş düşürücü, iltihap önleyici gibi pek çok özelliği bulunan hindistancevizi yağının artık pek çok sağlık sorununu tedavi ettiği kabul görmüştür. 18-19Tüm bu bilgiler ışığında diyebiliriz ki Hindistan cevizi yağı aslında kalbe dost, sağlıklı bir yağdır ve vücudumuzu pek çok açıdan destekleyerek daha düzgün çalışmasına yardımcı olur.

        Hindistan Cevizi Yağının araştırmalarla desteklenmiş faydaları şöyle sıralanabilir :
        1.
        Kan şekerini desteklemeye yardımcı, diyabet hastalarında önleyici ve tedavi edici
        2. Böbrek ve safra kesesi hastalıklarını önleyici ve tedavi edici
        3. Kan lipitlerini normalleştirici
        4. Alkol ve diğer toksinlerin karaciğere yaptığı hasarı önleyici
        5. İltihap önleyici, Ateş düşürücü
        6. Antiviral, antibakterel ve antifungal (CANDİDA) (özellikleri sayesinde pek çok bakteriyel hastalığı önleyici
        7. Kansere karşı mücadele edici
        8. Cildi ve saçları besleyici
        9. Sindirimi kolaylaştırıcı ve teşvik edici

        Referanslar1. Vaidya, U.V., et al. Vegetable oils fortified feeds in the nutrition of very low birthweight babies. Indian Pediatr 1992;29:1519-1527.
        2. Wang, X, et al. Enteral nutrition improves clinical outcome and shortens hospital stay after cancer surgery. J Invest Surg 2010;23:309-313.
        3. Burke, V. and Danks, D.M. Medium-chain triglyceride diet: its use in treatment of liver disease. Brit Med J 1966;2:1050-1051.
        4. Kuo, P.T. and Huang, N.N. The effect of medium chain triglyceride upon fat absorption and plasma lipid and depot fat of children with cystic fibrosis of the pancreas. J Clin Invest 1965;44:1924-1933.
        5. Cancio, M. and Menendez-Corrrada, R. Absorption of medium chain triglycerides in tropical sprue. Proc Soc Exp Biol (NY) 1964;117:182-185.
        6. Isselbacher, K.J., et al. Congenital beta-lipoprotein deficiency: an hereditary disorder involving a defect in the absorption and transport of lipids. Medicine (Baltimore) 1964;43:347-361.
        7. Holt, P.R. Dietary treatment of protein loss in intestinal lymphangiectasia. Pediatrics 1964;34:629-635.
        8. Greenberger, N.J., et al. Use of medium chain triglycerides in malabsorption. Ann Internal Med 1967;66:727-734.
        9. Zurier, R.B., et al. Use of medium-chain triglyceride in management of patients with massive resection of the small intestine. New Engl J Med 1966;274:490-493.
        10. Kono, H., et al. Dietary medium-chain triglycerides prevent chemically induced experimental colitis in rats. Transl Res 2010;155:131-141.
        11. Baba, N., et al. Enhanced thermogenesis and diminished deposition of fat in response to overfeeding with diets containing medium chain triglycerides. Am J Clin Nutr 1982;35:678-682.
        12. Zakaria, A.A., et al. Hepatoprotective activity of dried- and fermented-processed virgin coconut oil.Evidence-Based Complementary and Alternative Medicine2011;2011:142739.
        13. Monserrat, A.J., et al. Protective effect of coconut oil on renal necrosis occurring in rats fed a methyl-deficient diet. Ren Fail 1995;17:525-537.
        14. Mizushima, T., et al. Prevention of hyperlipidemic acute pancreatitis during pregnancy with medium-chain triglyceride nutritional support. Int J Pancreatol1998;23:187-192.
        15. Kono, H., et al. Medium-chain triglycerides enhance secretory IgA expression in rat intestine after administration of endotoxin. Am J Physiol Gastrointest Liver Physiol 2004;286:G1081-G1089.
        16. Labarthe, F., et al. Medium-chain fatty acids as metabolic therapy in cardiac disease. Cardiovasc Drugs Ther 2008;22:97-106.
        17. Prior, I.A., et al. Cholesterol, coconuts, and diet of Polynesian atolls: a natural experiment: the Pukapuka and Tokelau island studies. Am J Clin Nutr 1981;34:1552-1561.
        18. Zakaria, A.A., et al. In vivo antinociceptive and anti-inflammatory activities of dried and fermented processed virgin coconut oil. Med Princ Pract 2011;20:231-236.
        19. Intahphuak, S., et al. Anti-inflammatory, analgesic, and antipyretic activities of virgin coconut oil.Pharm Biol 2010;48:151-157.
        - See more at: Hindistan Cevizi Yağı “Doğal Mucize mi? | Buket Kaptan | Holistik Sağlık

        Yorum yap


        • #5


          Kabızlığa Ne İyi Gelir Bağırsağa Ne İyi Gelir Candida Mantarı Nasıl Tedavi Edilir.


          Cocos LNK ve Hindistan Cevizi Yağı Arasındaki Farklar Nelerdir Kullanım Şekli NasıldırYağ yakıcı.


          Hindistan cevizi yağı; nemlendirme ve kırışıkları önleme özelliği ile cilt bakımında kullanıldığı gibi, zayıflama ve emziren annelerin sütünün çoğalmasına da mucizevi bir etki yaratıyor. Gelin, bu yağın nelere iyi geldiğini birlikte inceleyim...
          * Hindistan cevizi yağı için doğal bir nemlendirici diyebiliriz. Tüm vücuda ve yüze uygulanabilir. Hücrelerdeki kolajen miktarı seviyesini yükseltir ve kırışıklıkların oluşmasını engeller.
          * Hindistan cevizi yağı orta zincirli yağ asitleri (MCFA)'ni içerir. Trans yağlara oranla oldukça sağlıklı bir yağ asididir ve metabolizmayı hızlandırır. Böylece kilo verimi hızlanır. Zayıflamak için kullanıldığında günde 2 yemek kaşığı tüketmeniz yeterli olacaktır.

          * Hindistan cevizi yağı; anti-bakteriyel bir özelliğe sahiptir ve mantar oluşumunu da engeller. Bir parça karbonatla karıştıracağınız hindistancevizi yağıyla dişlerinizi fırçalayabilirsiniz. Bunu ayda 1 kez uygulayın ve gerekirse diş hekiminize de danışın.
          * Vücudu nemlendiren Hindistan cevizi yağı, saçlara da çok iyi geliyor. Saça nem, parlaklık ve yumuşaklık kazandıran Hindistan cevizi yağını saçınıza sürün ve 15 dakika bekletin. Ardından ılık suyla saçlarınızı durulayın.
          * Emziren bir anneyseniz, anne sütünün bebeğin gelişiminde ne kadar önemli olduğunu da biliyorsunuzdur. Hindistan ceviz yağı, içeriğindeki sağlıklı yağlar sayesinde anne sütünün artmasına yardımda bulunuyor.
          * Hindistan cevizi yağı için doğal bir deodorant diyebilir. Bu yağın içerisinde bulunan laurik asitler, kötü kokuların oluşumuna engel oluyor.
          * Hindistan cevizi yağı güzellik rutininize eklemeniz gereken doğal bir mucize. Peeling ( vücuttaki ölü derileri soyma işlemi) için de kullanabileceğiniz bu yağ ile pürüzsüz ve yumuşacık bir cilde sahip olabilirsiniz. Hindistan cevizi yağını ve tozşekeri karıştırın. Ardından vücudunuza sürün ve ılık suyla durulayın.

          Yorum yap


          • #6


            Hindistan Cevizi Yağı, Cocos Yağı ile Tedavi, Hindistan Cevizi Yağı Doğal Antibiyotik, Laurik Asit Mikrop Öldürücüdür, Alzheimer Hastalığına Hindistan Cevizi Yağı, Cilt için Cocos Yağı, Saç Bakımı için Cocos Yağı, Survivor Oyuncuları Cocos ile Sağlıklı, Cocos Yağı Doğal Antibiyotik, Cocos Suyu Protein, Vitamin ve Mineral Bakımından Çok çok Zengindir, Hindistan Cevizi Suyu Protein, Vitamin ve Mineral Bakımından Çok çok Zengindir.

            Hindistancevizi yağı
            Son yıllarda, hindistancevizi ve özellikle hindistancevizi yağının popülaritesi, sağlık açısından sağlık yararları nedeniyle artmıştır. Hindistan cevizi yağı eğilimini körükleyen ünlü cirolar, GÖBEK YAĞINI ERİTİĞİ, KALBİ GÜÇLENDİRİĞİ, DEMANS ve ALZHEİMER HASTALIĞINA İYİ GELDİĞİ, BAĞIŞIKLIK SİSTEMİNİ GÜÇLENDİRDİĞİNİ iddia etti. Bir araştırma, Amerikalıların %72'sinin hindistancevizi yağını “sağlıklı” olarak değerlendirdiğini, ancak beslenme uzmanlarının sadece %37'sinin kabul ettiğini buldu. [1] Hindistancevizi yağı, ketojenikve Paleo diyetleri dahil olmak üzere birçok trend diyetinde popülerdir .
            Bitki bazlı gıdalar için tüketici talebi arttıkça, hindistancevizi yağı, hafif bir hindistancevizi aromasıyla zengin tadı için popüler bir yağ tercihi haline gelmiştir.
            Zengin
            Hindistan cevizi yağ ı %100 yağdır, %80-90'ı doymuş yağdır . Bu soğuk veya oda sıcaklıklarında sağlam bir doku verir. Yağ, yağ asidi adı verilen daha küçük moleküllerden oluşur ve hindistancevizi yağında birkaç tür doymuş yağ asidi vardır. Baskın tür laurik asittir (%47), miristik ve palmitik asitler daha az miktarda bulunur ve bu da zararlı LDL seviyelerini yükseltmeye yönelik araştırmalarda gösterilmiştir. Ayrıca eser miktarlarda bulunur, tekli doymamış ve çoklu doymamış yağlardır .
            Hindistan cevizi yağı kolesterol içermez, lif içermez ve sadece vitamin, mineral ve bitki sterol izleri içerir. Bitki sterolleri kan kolesterolünü taklit eden kimyasal bir yapıya sahiptir ve vücuttaki kolesterol emilimini engellemeye yardımcı olabilir. Bununla birlikte, birkaç yemek kaşığı hindistancevizi yağı içinde bulunan miktar yararlı bir etki oluşturmak için çok küçüktür.
            Hindistan Cevizi Yağı ve Sağlık
            Hindistan cevizi yağı için yapılan sağlık taleplerinin çoğu, süpermarket raflarında en fazla kullanılan ticari hindistancevizi yağı değil, %100 orta zincirli trigliseritlerden (MCT) yapılmış özel bir hindistancevizi yağı formülasyonu kullanan araştırmaya atıfta bulunmaktadır. MCT'ler diğer yağlardan daha kısa bir kimyasal yapıya sahiptir ve bu yüzden vücut tarafından hızla emilir ve kullanılır. Sindirimden sonra, MCT'ler karaciğerde derhal enerji için kullanıldıkları yere giderler. Teori, bu hızla emilen formun tokluğu arttırdığı ve yağ depolanmasını önlediğidir. Hindistan cevizi yağı çoğunlukla bir MCT olmayan lorik asit içerir. Laurik asit daha yavaş emilir ve diğer uzun zincirli yağ asitleri gibi metabolize edilir. Bu nedenle, laurik asit dışındaki orta zincirli trigliseritler içeren özel olarak oluşturulmuş bir MCT hindistancevizi yağından bildirilen sağlık yararları, doğrudan ticari hindistancevizi yağlarına uygulanamaz. [2]

            Her ne kadar epidemiyolojik çalışmalar, hindistancevizi kendi ana diyetlerinin bir parçası olarak (örneğin Hindistan, Filipinler, Polinezyası) içeren insan gruplarının düşük kardiyovasküler hastalık oranlarına sahip olduğunu bulsa da, diyet ve diğer birçok özelliğin açıklayıcı olabileceğini belirtmek önemlidir. Ayrıca, yedikleri hindistan cevizi türü tipik bir Batı diyetinde kullanılandan farklıdır. Bu gruplar işlenmiş hindistancevizi yağını değil, hindistancevizi eti veya preslenmiş hindistancevizi kreması olarak hindistancevizinin tamamını, lif bakımından zengin ve işlenmiş ve şekerli yiyeceklerin az olduğu yerli gıda diyetiyle birlikte tüketir. [2]
            • Hindistan cevizi ürünlerinin (yağ, süt, et veya krem) kullanımı ile ilgili bir literatür taraması 21 gözlemsel ve klinik çalışmayı içermektedir. [2]
              • Epidemiyolojik çalışmalar Samoa, Filipinler, Yeni Zelanda ve Yeni Gine'den gelen insanları geleneksel diyetlerinin bir parçası olarak tüm hindistancevizi tüketen gözlemledi. Genel olarak diyetleri benzerdi: hindistancevizi eti ve sütü, taze meyveler, sebzeler ve balık. Araştırmalar, daha fazla hindistancevizi yağı yiyenlerin, faydalı HDL kolesterol seviyelerini arttırdığını, aynı zamanda toplam kolesterol ve trigliseritleri arttırdığını buldu.
              • Bir hindistancevizi yağı diyetinin bir müdahalesiyle 5-8 hafta süren, sekiz 9-83 katılımcı ile sekiz küçük kısa süreli klinik çalışma incelenmiştir. Bir tereyağı veya doymamış yağ (zeytin veya aspir yağı) diyetiyle karşılaştırıldığında, hindistancevizi yağı toplam kolesterol, HDL ve zararlı LDL seviyelerini doymamış yağlardan daha fazla arttırdı, fakat tereyağdan fazla değil. Hindistancevizi yağının da toplam ve LDL kolesterolü, sığır yağı ve hurma yağı gibi diğer doymuş yağlardan daha yüksek veya benzer bir seviyeye yükselttiği bulunmuştur.
              • Yazarlar, hindistancevizi yağının, zararlı LDL de dahil olmak üzere kan kolesterolünü arttırma üzerindeki etkileri ve bazı durumlarda trigliseritleri ve kolesterolü arttırıcı etkilerinin diğer doymuş yağlarla karşılaştırılabilir olması nedeniyle, yağın kalp-sağlıklı bir gıda olarak görülmemesi gerektiği ve diyette sınırlı olun.
            • Amerikan Kalp Birliği (AHA) , 2017 yılında doymuş yağların (hindistancevizi ve diğer tropik yağlar dahil) doymamış yağlar ile değiştirilmesi konusunda bilimsel bir bildiri yayınladı . Kontrollü yedi denemeye dayanarak, hindistancevizi yağı zararlı LDL kolesterol seviyelerini yükselttiği tespit edildi. AHA, hindistancevizi yağı kullanımına karşı tavsiyede bulundu ve tüm doymuş yağların sınırlandırılmasını önerdi. Kalp hastalığı olan ya da kalp hastalığı olanlar için, doymuş yağdan toplam kalorinin% 6'sından fazlasını veya 2000 kalorili bir diyete dayanarak yaklaşık 13 gram tavsiye etmiyorlar. Bir çorba kaşığı hindistancevizi yağı yaklaşık 12 gram doymuş yağda bu sınıra yaklaştı. [3]
            • Hindistancevizi yağı diğer yağ kaynaklarından olduğu kadar kalori ve toplam yağ içerir, yemek kaşığı başına yaklaşık 120 kalori ve 14 gram yağ içerir. Hindistancevizi yağı eşsiz bir tada sahiptir ve sağlıklı bir beslenme düzeni bağlamında, pişirme ve pişirmede diğer yağlara periyodik olarak alternatif olarak az miktarda kullanılır .
            Satın Alma ve Depolama
            Hindistan cevizi yağı, taze hindistan cevizi eti veya kurutulmuş hindistan cevizi eti kopra olarak basılarak yapılır. Virgin hindistancevizi yağı taze et kullanırken, rafine hindistancevizi yağı tipik olarak kopra kullanır. Zeytinyağının aksine “sızma” ve “sızma” terimleri hindistancevizi yağıyla düzenlenmez. Bu terimlerle etiketlenmiş ürünlerde fark yoktur.

            Bakire veya Ekstra Bakire (değiştirilebilir terimler): “Kuru” bir yöntem kullanıyorsanız, olgun hindistancevizinin taze hindistancevizi eti az miktarda ısı ile hızlı bir şekilde kurutulur ve ardından yağı çıkarmak için bir makine ile preslenir. “Islak” bir yöntem kullanılıyorsa, makine süt ve yağ elde etmek için taze hindistancevizi etine basar. Süt, fermantasyon, enzimler veya santrifüj makineleriyle yağdan ayrılır. Elde edilen yağ, hızlı sote yapmak veya pişirmek için kullanılabilen ancak kızartma gibi çok yüksek sıcaklıklar için uygun olmayan yaklaşık 176 ℃ duman noktasına sahiptir. Ayrıca hindistancevizi yağı etiketlerinde aşağıdaki terimleri de görebilirsiniz:

            Expeller-preslenmiş - Bir makine sık sık buhar veya ısı kullanımıyla yağı hindistan cevizi etinden bastırır.

            Soğuk preslenmiş - Yağ, ısı kullanılmadan preslenir. Sıcaklık 49℃ altında kalır; Bunun daha fazla besin tutmaya yardımcı olduğuna inanılıyor.

            Rafine : Kopra, yağı serbest bırakmak için makineye bastırılır. Yağ daha sonra yağı buharlaştırmak için buharlaştırılır veya ısıtılır ve safsızlıkları ve kalan bakterileri gidermek için killerden süzülerek "ağartılır". Bazen, kopradan yağ çıkarmak için heksan gibi kimyasal çözücüler kullanılabilir. Elde edilen yağ, yaklaşık 204-232℃ daha yüksek bir duman noktasına sahiptir ve tatsız ve kokusuzdur.

            Kısmen Hidrojene : Hindistancevizi yağındaki az miktarda doymamış yağ, raf ömrünü uzatmak ve katı yapısını ılık sıcaklıklarda tutmak için hidrojenlenir veya kısmen hidrojenlenir. Bu işlem kaçınılması gereken trans yağları oluşturur.
            Hindistan cevizi yağını serin ve karanlık bir yerde kapalı bir kapta veya buzdolabında saklayın. Raf ömrü işleme türüne ve nasıl depolandığına bağlı olarak değişecektir. Rafine hindistancevizi yağı genellikle birkaç ay sürer, oysa bakire hindistancevizi yağı, ısıdan ve ışıktan uygun şekilde saklanırsa 2-3 yıl sürebilir. Bozulma belirtileri arasında küf, sarı renk tonu veya “kapalı” koku veya tatlar bulunur.
            Yapmak
            Hindistan cevizi yağının erime noktası 25 ℃. Yağ çok sıcak bir günde sıvılaşırsa, kullanmadan önce iyice karıştırın.
            • Hindistan cevizi yağı yerine tereyağı veya sebze kısaltması kullanıldığında, daha yüksek oranda katı yağ oranı nedeniyle tarifte listelenen tereyağı miktarından %25 daha az hindistan cevizi yağı kullanın. Hindistan cevizi aroması istemiyorsanız rafine hindistan cevizi yağı kullanın.
            • Sebzeyi bir çorba kaşığı sote edilmiş hindistancevizi yağı ile lezzetlendirmek için.
            • Lezzeti arttırmak için sos ve körilere bir çorba kaşığı virgin hindistan cevizi yağı ekleyin.
            Biliyor musun?
            • Filipinler, dünyanın en büyük hindistan cevizi yağı üreticisidir. Endonezya ve Hindistan bir sonraki en büyük üreticilerdir. Filipinler, Avrupa Birliği, ABD ve Hindistan, hindistancevizi yağının en büyük tüketicileridir.
            • Hindistan cevizi yağı cilt ve saçlar için etkili bir nemlendiricidir. Az miktarda kullanarak, doğrudan cilde nazikçe masaj yapın. Kuru veya kıvırcık saçlar için, saç miline küçük bir miktar uygulayın ve istenen süre (birkaç dakikadan bir dakikaya kadar) bekletin ve sonra yıkayın.
            Referanslar
            1. Quealy, K. ve Sanger-Katz, M. Suşi 'Sağlıklı' mı? Granola'dan ne haber? Amerikalılar ve Diyetisyenlerin Anlaşamadığı Yer. New York Times . 5 Temmuz 2016
            2. Eyres L, Eyres MF, Chisholm A, Kahverengi RC. Hindistan cevizi yağı tüketimi ve insanlarda kardiyovasküler risk faktörleri. Beslenme değerlendirmeleri . 2016 1 Nisan; 74 (4): 267-80.
            3. Çuvallar FM, Lichtenstein AH, Wu JH, Appel LJ, Oluşturan MA, Kris-Etherton PM, Miller M, Rimm EB, Rudel LL, Robinson JG, Taş NJ. Diyetsel yağlar ve kardiyovasküler hastalıklar: Amerikan Kalp Birliği'nin başkanlık danışmanlığı. Sirkülasyon . 2017 Ocak 1: CIR-0000000000000510.

            Yorum yap


            • #7
              Çekirdek algılayıcı molekül farnesolün taklit edilmesi yoluyla Candida albicans'a karşı orta zincirli yağ asitlerinin antibiyofilm ve antifungal aktiviteleri

              Jin-Hyung Lee , 1 , † Yong‐Guy Kim , 1 , † Sagar Kiran Khadke , 1 ve Jintae Lee 1
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler

              Ek Malzemeler
              Git: Soyut


              Orta zincirli yağ asitlerinin çekirdek algılayıcı molekül farnesolü taklit ettiğini gösterdik. Altı kanıt kümesi, yani, (i) yapısal benzerlikler, (ii) hif büyümesinin inhibisyonu, (iii) biyofilm oluşumunun inhibisyonu, (iv) farnesol üretiminin inhibisyonu, (v) sterol üretiminin inhibisyonu ve (vi) orta zincirli yağ asitlerinin farnesol sinyallemesine müdahale ettiğini ve antibiyofilm ve antivirülans aktivitelerinin farnesolünkinden daha üstün olduğunu gösteren gen ekspresyonları üzerindeki etkileri. Bulgularımız, prokaryotlarda ve ökaryotlarda bulunan yağ asitlerinin mantar iletişimini engelleyebileceğini ve orta zincirli yağ asitlerinin mantar Candida türlerine karşı güçlü antibiyofilm ve mantar önleyici ajanların tasarımı için gelişimsel başlangıç ​​noktaları olarak kullanılabileceğini göstermektedir.


              Git: Özet


              Candida biyofilmleri, geleneksel antifungal terapötiklere ve konakçı bağışıklık sistemine toleranslıdır. Maya hücrelerinin hifaya geçişi, C. albicans biyofilm gelişiminde önemli bir adım olarak kabul edilir ve bu geçiş, çekirdek algılayıcı molekül farnesol tarafından inhibe edilir. Farnesolü taklit eden yağ asitlerinin C. albicans tarafından hifal ve biyofilm oluşumunu etkileyebileceğini varsaydık . 31 doymuş ve doymamış yağ asidi arasından altı orta zincirli doymuş yağ asidi, yani heptanoik asit, oktanoik asit, nonanoik asit, dekanoik asit, undekanoik asit ve laurik asit, C. albicans biyofilm oluşumunu etkin bir şekilde %75'ten fazla inhibe etti. 100–200 µg ml -1 aralığında MİK'lerle 2 µg ml -1. 2 µg ml -1'deki bu altı yağ asidi ve 100 µg ml -1'deki farnesol, hif büyümesini ve hücre agregasyonunu inhibe etti. C. albicans kültürlerine yağ asitlerinin eklenmesi farnesol ve sterollerin üretimini azaltmıştır. Ayrıca, heptanoik veya nonanoik asidin neden olduğu birkaç hiphal ve biyofilm ile ilgili genin aşağı regülasyonu, farnesolün neden olduğu değişikliklere çok benziyordu. Ayrıca, en etkili bileşik olan nonanoik asit, bir Caenorhabditis elegans modelinde C. albicans'ın virülansını azaltmıştır. Sonuçlarımız, orta zincirli yağ asitlerinin farnesolden daha etkili hifal büyüme ve biyofilm oluşumunu engellediğini göstermektedir.

              Git: Tanıtım


              Biyofilmler, inert materyaller, sentetik polimerler ve kalıcı tıbbi cihazlar dahil olmak üzere çeşitli biyotik veya abiyotik yüzeylerde oluşabilen bakteri, mantar veya maya topluluklarıdır. Biyofilmler mikrobiyal toplulukları besin sınırlamalarından, konak savunma sistemlerinden ve antimikrobiyal ajanlardan korur ve bu nedenle genellikle kalıcı enfeksiyonlarla ilişkilidir (Donlan, 2002 ; Hall‐Stoodley ve diğerleri , 2004 ).). Bu nedenle, patojenler tarafından biyofilm oluşumunu kontrol etmek için yeni stratejiler gereklidir. Bununla birlikte, geleneksel antibiyotikler ve antifungal ajanlar, öncelikle, genellikle ilaç direnci ile sonuçlanan hücre büyümesini inhibe etmek için tasarlanmıştır. Bu nedenle planktonik hücre büyümesini engellemeyen ve dolayısıyla ilaç direnci riskini azaltan toksik olmayan biyofilm inhibitörlerinin belirlenmesi önem kazanmıştır (Wright, 2015 ; Defoirdt, 2018 ).

              Candida albicans , mukozal yüzeylerde, gastrointestinal ve genitoüriner yollarda bulunur ve sistemik ve invaziv enfeksiyonların en sık nedenidir. Mantar , idrar sondaları, diş malzemeleri, yapay kalp kapakçıkları, eklem protezleri, penil implantlar ve rahim içi cihazlar gibi konakçı dokuları ve kalıcı tıbbi cihazları (Ramage ve diğerleri , 2005 ) kolayca kolonize eder (Sardi ve diğerleri , 2013 ; de Oliveira ve diğerleri ). diğerleri ., 2019 ; Handorf ve diğerleri ., 2019 ). Ayrıca, biyofilmler genellikle geleneksel antifungal terapötiklere ve konakçı bağışıklık sistemine toleranslıdır (Nobile ve diğerleri , 2006 ).). Candida biyofilmleri maya hücreleri, yalancı hifler ve hifler içerir. Maya hücrelerinin hifaya geçişi (filamentasyon) stabil biyofilm oluşumu için gereklidir ve bu nedenle hif geçişi Candida enfeksiyonlarının çok önemli bir virülans faktörü olarak kabul edilir (Carradori ve diğerleri , 2016 ). Transkripsiyon faktörleri, hücre duvarı ile ilgili proteinler ve diğerleri dahil olmak üzere çeşitli genler, C. albicans tarafından hif oluşumu ve biyofilm gelişiminde rol oynar (Finkel ve Mitchell, 2011 ; Araujo ve diğerleri , 2017 ; Pandin ve diğerleri , 2017 ; Song ve diğerleri , 2020). Ayrıca, çekirdek algılayıcı (QS) molekülü farnesolün, C. albicans (Ramage ve diğerleri , 2002 ; Polke ve diğerleri ., 2018 ) ve Candida dubliniensis (Jabra- Rizk ve diğerleri , 2006 ). Ek olarak, çeşitli doğal ve sentetik farnesol analogları (Shchepin ve diğerleri , 2003 ) , etki modları belirsiz kalmasına rağmen C. albicans filamentasyonunu inhibe eder (Polke ve diğerleri , 2018 ).

              Yağ asitleri tüm yaşam formlarında yaygındır. 70'den fazla doğal olarak oluşan yağ asidi tanımlanmıştır ve kelimenin tam anlamıyla binlerce doğal kaynak vardır (Kenar ve diğerleri , 2017 ). Yağ asitleri, hayvanlar için önemli hücresel yapısal bileşenler ve önemli enerji kaynaklarıdır (Desbois ve Smith, 2010 ) ve potansiyel alternatif antimikrobiyal ajanlar oldukları öne sürülmüştür (Desbois ve Smith, 2010 ; Yoon ve diğerleri , 2018 ). Son zamanlarda, birkaç çalışma, yağ asitlerinin MIC'lerinden daha düşük konsantrasyonlarda anti-hifal ve antibiyofilm aktiviteleri sergilediğini bildirmiştir (Kumar ve diğerleri , 2020 ).). Örneğin, Staphylococcus aureus (Davies ve Marques, 2009 ; Kim ve diğerleri , 2018 ), Pseudomonas aeruginosa (Inoue ve diğerleri , 2008 ; Wenderska ve diğerleri ., 2011 ), Candida albicans (Murzyn ve diğerleri ., 2010 ; Muthamil ve diğerleri ., 2018 ; Prasath ve diğerleri ., 2019 ) ve diğerleri (Wenderska ve diğerleri .,2011 ; Santhakumari ve diğerleri , 2017 ; Ramanathan ve diğerleri , 2018 ; Cui ve diğerleri , 2019 ). Daha spesifik olarak, kaprik asit (10:0) ve laurik asit (12:0) planktonik Candida hücrelerinin büyümesini inhibe eder (Bergsson ve diğerleri , 2001 ) ve bütanoik asit (4:0) C. albicans tarafından hifal oluşumunu engeller ( Noverr ve Huffnagle, 2004 ). Stearidonik asit (18:4 n-3), eikosapentaenoik asit (20:5), dokosapentaenoik asit (22:5) (Thibane ve diğerleri , 2010 ) ve konjuge linoleik asit, C. albicans tarafından hipal büyümeyi inhibe eder(Shareck ve diğerleri ., 2011 ) ve trans -2-dekenoik asit (10:Δ2) (Vilchez ve diğerleri ., 2010 ), undekenoik asit (10:0) (Shi ve diğerleri ., 2016 ; Muthamil ve diğerleri ., 2018 ) ve miristik asit (14:0) (Prasath ve diğerleri , 2019 ) hif büyümesini ve biyofilm oluşumunu engeller. Ancak, araşidonik asit, oleik asit, linolenik asit veya γ-linolenik asit gibi uzun zincirli doymamış yağ asitleri hipal gelişimi etkilememiştir (Noverr ve Huffnagle, 2004 ). Son zamanlarda, oleik asidin (18:1) (Muthamil ve ark .,2020 ) ve linoleik asit (18:2) (Kim ve diğerleri , 2020 ), planktonik hücre büyümesini etkilemeden C. albicans tarafından filamentasyon ve biyofilm oluşumunu inhibe etti .

              QS molekülü farnesol (3,7,11-trimetil-2,6,10-dodecatrien-1-ol) yapısal olarak birkaç doymuş ve doymamış yağ asidine benzer. Bu nedenle, bazı yağ asitlerinin farnesolü taklit edebileceğini ve C. albicans tarafından filamentasyon ve biyofilm oluşumunu engelleyebileceğini varsaydık . Bu çalışmada, 31 doğal yağ asidi (2 kısa zincirli, 7 orta zincirli, 16 uzun zincirli ve 6 çok uzun zincirli) başlangıçta C. albicans'a karşı antifungal ve antibiyofilm aktiviteleri açısından tarandı . Yağ asitlerinin hifal ve biyofilm gelişimini nasıl kontrol ettiğini anlamak için hifal büyümesini, hücre agregasyonunu ve biyofilm oluşumunu araştırmak için konfokal lazer tarama mikroskobu ve taramalı elektron mikroskobu kullandık. Ayrıca, yağ asidinin moleküler temeli, vücudun fizyolojisinde değişikliklere neden oldu.C. albicans , transkriptomik testler kullanılarak ve farnesol ve sterol üretimi test edilerek araştırıldı. Ek olarak, yağ asitlerinin anti-hifal ve antibiyofilm etkilerini ve sitotoksik olmayan doğalarını doğrulamak için bir in vivo Caenorhabditis elegans modeli kullanıldı. Farnesol, bu çalışma boyunca kontrol olarak kullanıldı.

              Git: Sonuçlar

              Yağ asitlerinin antifungal ve antibiyofilm aktiviteleri


              Yağ asitlerinin C. albicans'a karşı antibiyofilm aktivitelerini araştırmak için , 31 yağ asidi (17 doymuş yağ asidi ve 14 doymamış yağ asidi) başlangıçta 96 oyuklu plakalarda 10 µg ml -1 konsantrasyonda tarandı . Birçoğunun C. albicans tarafından biyofilm oluşumunu engellediği , ancak çok farklı etkinliklerle olduğu bulundu. Yağ asitlerinin varlığında iki C. albicans suşu DAY185 ve ATCC 10231 tarafından biyofilm oluşumu hakkında ayrıntılı bilgi Tablo S1'de verilmektedir . En önemlisi, 10 µg ml -1'de altı orta zincirli doymuş yağ asidi (7:0, 8:0, 9:0, 10:0, 11:0 ve 12:0) C. albicans'ı önemli ölçüde inhibe etti.% 85'ten fazla biyofilm oluşumu. Yağ asitleri 14:0, 14:1, 16:1, 18:2, 18:3 ve 20:4 ayrıca her iki suş tarafından biyofilm oluşumunu önemli ölçüde inhibe etti (Tablo S1 ). Çoğu yağ asidinin antibiyofilm etkinlikleri, iki suş için benzerdi ve bu nedenle, daha fazla çalışma sırasında iyi çalışılmış DAY185 suşuna odaklandık. Bu sonuçlar, undesilenik asit (11:0) (Shi ve diğerleri ., 2016 ; Muthamil ve diğerleri ., 2018 ), miristik asit (14:0) (Prasath ve diğerleri ., 2019 ), oleik asit (18:1) (Muthamil ve diğerleri , 2020 ) ve linoleik asit (18:2) (Kim ve diğerleri .,2020 ) C. albicans tarafından biyofilm oluşumunu inhibe etti . Ancak bu çalışma, düşük konsantrasyonlarda 7:0, 8:0, 9:0, 10:0 ve 12:0 yağ asitlerinin 11:0 ile karşılaştırılabilir antibiyofilm aktivitelerine sahip olduğunu bildirmektir.

              24 yağ asidinin minimum inhibitör konsantrasyonları (MIC'ler) Tablo S1'de gösterilmektedir . Çoğu yağ asidinin MIC'leri > 500 µg ml -1 idi , ancak beş orta zincirli doymuş yağ asidinin (7:0, 8:0, 9:0, 10:0 ve 11:0) değerleri 100 ile 200 arasında değişiyordu. µg ml -1 . Diğer 7 yağ asidinin MIC'leri, sulu fazda düşük çözünürlük (< 100 µg ml -1 ) nedeniyle belirlenemedi. Kaprik asidin (10:0 veya dekanoik asit olarak adlandırılır) ve laurik asidin (12:0) mantar önleyici aktiviteleri daha önce bildirilmiştir (Bergsson ve diğerleri , 2001 ) ve bizim sonuçlarımızla uyumludur. Önemli olarak, altı orta zincirli doymuş yağ asidi (7:0, 8:0, 9:0, 10:0, 11:0 ve 12:0) bir alt inhibitör konsantrasyonda (10 µg ml -1), iki C. albicans suşu tarafından biyofilm oluşumunu güçlü bir şekilde engellediği bulundu (Tablo S1 ). Orta zincirli doymuş yağ asitleri, C. albicans biyofilm oluşumunu engelledi


              Ayrıntılı bir biyofilm çalışması, altı orta zincirli doymuş yağ asidinin (7:0, 8:0, 9:0, 10:0, 11:0 ve 12:0) doza bağlı olarak C. albicans biyofilm oluşumunu 96–3'te engellediğini gösterdi. iyi polistiren plakalar (Şek. 1 A). Özellikle oktanoik asit (8:0), nonanoik asit (9:0), dekanoik asit (10:0) ve undekanoik asit (11:0) biyofilm oluşumunu 2 µg ml -1'de %75'ten fazla engelledi . Nonanoik asit (9:0) en aktif yağ asidi olarak göründü. Ek olarak, 100 µg ml -1'deki farnesol, C. albicans biyofilm oluşumunu da önemli ölçüde inhibe etti (Şek. 1B), daha önce bildirildiği gibi (Ramage ve diğerleri , 2002 ). Bununla birlikte, altı orta zincirli yağ asidinin antibiyofilm aktiviteleri, farnesolünkinden çok daha büyüktü. Özellikle, bu yağ asitlerinin antibiyofilm konsantrasyonları (1–2 µg ml -1 ) MIC'lerinden (100–200 µg ml -1 ) yaklaşık 100 kat daha düşüktü , bu da düşük konsantrasyonlarda C. albicans biyofilm oluşumunu etkili bir şekilde engelledikleri anlamına geliyor. mantar öldürücü etkisi olmadan. Heptanoik asit (7:0) ve nonanoik asit (9:0) düşük konsantrasyonlarda en fazla antibiyofilm aktivitesini sergilediği ve ˜ 100 µg ml -1 MIC'ye sahip olduğu için, daha az aktif laurik asit (12:0) ve farnesol (pozitif kontrol) ile birlikte sonraki çalışmalarda bunlara odaklandık.

              1
              Orta zincirli doymuş yağ asitlerinin C. albicans'a karşı antibiyofilm aktiviteleri . C. albicans DAY185 ile biyofilm oluşumları , her bir yağ asidi, heptanoik asit (7:0), oktanoik asit (8:0), nonanoik asit (9:0), dekanoik asit (10:0), undekanoik asit varlığında nicelleştirilmiştir. asit (11:0) veya laurik asit (12:0) (A) veya farnesol (B), 96 oyuklu plakalarda 24 saat inkübasyondan sonra. Hata çubukları standart sapmaları gösterir. * P < 0.05, tedavi edilmeyen kontrollere karşı. Polistiren plakalar üzerinde C. albicans tarafından biyofilm oluşumları, konfokal lazer mikroskopisi (C) ve COMSTAT analizi (D) ile her bir yağ asidi (2 µg ml -1 ) veya farnesol (50 veya 100 µg ml -1 ) varlığında gözlendi.

              Biyofilm inhibisyonu, bir konfokal lazer tarama mikroskobu ile ayrıca analiz edildi. 24 saatlik kültürden sonra tedavi edilmeyen kontrollerde, C. albicans yoğun biyofilmler oluşturdu (kalınlık > 40 µm ve neredeyse %100 yüzey kaplaması sağladı), oysa 2 µg ml'de 7:0, 9:0 veya 12:0 varlığı - 1 önemli ölçüde azaltılmış biyofilm yoğunlukları ve kalınlıkları. Öte yandan, 50 µg ml -1'deki farnesol kayda değer ölçüde daha az inhibe edildi ve 100 µg ml -1'deki farnesol açıkça inhibe etti (Şek. 1C). Biyofilm azalması, COMSTAT biyofilm yazılımı kullanılarak da ölçüldü (Heydorn ve diğerleri , 2000 ) ve sonuçlar 7:0, 9:0 ve 12:0 biyofilm biyokütlesini, ortalama kalınlığı ve substrat kapsamını önemli ölçüde azalttı. Spesifik olarak, biyofilm biyokütlesi, kalınlığı ve substrat kapsamı, tedavi edilmemiş kontrollere kıyasla 7:0, 9:0 ve 12:0 > %95 oranında azaltıldı (Şekil 1a). 1B). Orta zincirli yağ asitleri, hif büyümesini ve hücre agregasyonunu inhibe etti


              Maya hücrelerinin hifal hücrelere dimorfik geçişi ve hücre agregasyonu, C. albicans tarafından biyofilm olgunlaşmasının ön koşullarıdır (Chandra ve diğerleri , 2001 ). Yağ asitlerinin C. albicans morfolojisi üzerindeki etkisini incelemek için patates dekstroz agar üzerinde C. albicans koloni oluşumunu izledik , hücre agregasyon tahlili gerçekleştirdik ve hifal büyümesini değerlendirmek için taramalı elektron mikroskobu (SEM) kullandık.

              Muamele edilmemiş C. albicans'ta , 6 günlük inkübasyondan sonra kolonilerden belirgin hif çıkıntıları gözlenirken, 2 µg ml -1'de 7:0, 9:0 veya 12:0 varlığı 6 gün sonra bu çıkıntıları tamamen bastırdı. Farnesol 100 µg ml -1'de kısmen azaltılmış hif çıkıntısı (Şek. 2A). PDB ortamında 24 saat inkübasyondan sonra, tedavi edilmeyen kontrollerde çoğunlukla hifler ve hiflerle dolaşmış büyük hücre agregasyonları gözlendi. Bununla birlikte, 7:0, 9:0 veya 12:0 ile yapılan tedaviler hücre kümelenmelerini çok azalttı ve farnesol 100 µg ml- 1'de kümelenmeyi biraz azalttı (Şek. 2B). SEM analizi, 7:0, 9:0 ve 12:0'ın hepsinin hif oluşumunu büyük ölçüde bastırdığını doğruladı. İşlem görmemiş kontrol biyofilmleri ağırlıklı olarak hif ve birkaç psödohifadan oluşuyordu, ancak 7:0, 9:0 veya 12:0 varlığında büyütülen biyofilmler çok daha kısa hiflere sahipti ve ağırlıklı olarak maya ve psödohif hücrelerinden oluşuyordu (Şekil 1a). 2C). Özellikle, 2 µg ml -1'de 7:0, 9:0 ve 12:0 hif çıkıntılarını, hücre agregasyonunu ve hif büyümesini 100 μg ml -1'de farnesolden daha etkili bir şekilde bastırdı ve hif büyümesi ve hücre agregasyonu sonuçları aynı hizadaydı. bu yağ asitlerinin gözlemlenen antibiyofilm aktiviteleri ile. Birlikte ele alındığında, bu sonuçlar orta zincirli yağ asitlerinin C. albicans hiphal oluşumunu, hücre agregasyonunu ve biyofilm oluşumunu güçlü bir şekilde engellediğini göstermektedir.

              İncir. 2
              Orta zincirli yağ asitleri ile hif filamentasyonunun ve agregasyonun inhibisyonu. Katı ortamda C. albicans morfolojisi (A). C. albicans , 2 µg ml -1'de heptanoik asit (7:0), nonanoik asit (9:0) veya laurik asit (12:0) veya 100 µg ml'de farnesol yokluğunda veya varlığında PDA katı plakaları üzerinde çizildi. -1 . Koloni morfolojileri, 37°C'de 6 gün süreyle inkübasyon sırasında gözlendi. PDB ortamında (B) filamentasyonun ve hücre agregasyonunun inhibisyonu. 24 saat inkübasyondan sonra hifler görüntülendi. A ve B panellerindeki ölçek çubukları 100 µm'yi temsil eder. Hiçbiri; işlem görmemiş kontrol Yağ asitleri tarafından PDB ortamında büyütülen C. albicans biyofilmlerinde hiphal inhibisyonunun SEM gözlemi (C). Ölçek çubukları 15 µm'yi temsil eder. Orta zincirli yağ asitleri, farnesol ve sterollerin üretimini azalttı


              Candida türlerinde farnesol , biyofilm oluşumu, morfojenik geçiş ve hatta hücre ölümü gibi çeşitli virülans özelliklerini kontrol eden iyi bilinen bir QS molekülüdür (Ramage ve diğerleri , 2002 ; Polke ve diğerleri , 2018 ). Farnesol ile yapısal olarak benzer olan yağ asitlerinin farnesol ile ilişkili QS ile etkileşime girdiğini varsaydık ve bu nedenle bunların farnesol ve sterol üretimi üzerindeki etkilerini araştırdık. İlginç bir şekilde, üç orta zincirli yağ asidinden (7:0, 9:0 veya 12:0) herhangi birinin eklenmesi farnesol üretimini önemli ölçüde azaltırken, daha az aktif antibiyofilm bileşiği 16:0 (palmitik asit) farnesolü hafifçe azalttı. üretim (Şek. 3 A). Örneğin, bir yağ asidinin yokluğunda C. albicans DAY185, PDB ortamında 15.6 ± 0.5 uM farnesol üretti, bu önceki raporlarla uyumludur (Hornby ve diğerleri , 2001 ; Weber ve diğerleri , 2008 ), oysa mevcudiyetinde 10 μg ml -1'de 7:0, 9:0, 12:0 veya 16:0 farnesol üretimi sırasıyla %85 ± 3, %91 ± %1, %66 ± %15 ve %13 ± 9 azaldı (Şek. 3 A), 10 µg ml-1'de 7:0 veya 9:0 mevcut kültür biyokütleleri , işlenmemiş kontrole (3.9 g l - 1 ) kıyasla sadece %5 ve %13 oranında azalmıştır . Bu sonuçlar, bu orta zincirli yağ asitlerinin, ancak uzun yağ asitlerinin değil, farnesol sentezini olumsuz etkilediğini göstermektedir.

              Şekil 3
              Orta zincirli yağ asitlerinin farnesol ve sterollerin üretimi üzerindeki etkileri. Farnesol seviyeleri, C. albicans DAY185'in PDB ortamında 24 saat (A) kültürlenmesinden sonra HPLC ile ölçülmüştür . 10 µg ml- 1'de heptanoik asit (7:0), nonanoik asit (9:0), laurik asit (12:0) veya palmitik asit (16:0) veya 50 veya 100 µg ml-1'de farensol eklendi . kültür başlar. Sterol üretimi, 60 dakika (B) için PDB ortamında C. albicans kültürlendikten sonra filipin boyama ile değerlendirildi . Ölçek çubukları 5 µm'yi temsil eder.

              Farnesol, C. albicans'ta sterol sentezinin bir öncüsüdür (Hornby ve diğerleri , 2001 ; Nickerson ve diğerleri , 2013 ). Ergosterol (ergosta-5,7,22-trien-3β-ol) mantarlarda bulunan bir steroldür ve mantar hücre zarlarının önemli bir bileşenidir (Weete ve diğerleri , 2010 ). C. albicans'ta sterol dağılımını incelemek için sıklıkla kullanılan filipin için boyama yoluyla yağ asitlerinin sterol üretimi üzerindeki etkisini araştırdık . Yağ asitlerinin yokluğunda, steroller psödohyphae uçlarında lokalizeydi (Şek. 3B). 10 μg ml -1'de 7:0, 9:0 veya 12:0 ile tedavi, sterol üretimini belirgin şekilde inhibe ederken, 16:0 ile tedavinin çok az inhibitör etkisi oldu. Farnesol 50 μg ml -1'de hafifçe inhibe etti ve 100 μg ml -1'de sterol üretimini daha da inhibe etti (Şek. 3B). 7:0, 9:0 veya 12:0 sterol inhibisyonunun muhtemelen farnesol sentezinin inhibisyonundan kaynaklandığı görülmektedir. Farnesol tarafından yüksek konsantrasyonlarda sterol inhibisyonunun muhtemelen C. albicans'ta farnesolün apoptotik aktivitesine yol açtığı bildirildi (Shirtliff ve diğerleri , 2009 ). Bu nedenle, yüksek konsantrasyonlarda 7:0, 9:0 ve 12:0'ın sterol inhibisyonu yoluyla C. albicans'ın hücre zarına zarar verebileceği görülmektedir . C. albicans'ta heptanoik asit (7:0), nonanoik asit (9:0) veya farnesol ile genlerin farklı ifadeleri


              qRT-PCR, heptanoik asit (7:0) ve nonanoik asidin (9:0), biyofilm oluşumu ve hiphal büyümesinin inhibisyonu ile ilişkili 35 biyofilm ve hipha ile ilişkili genin ifadeleri üzerindeki etkilerini araştırmak için kullanıldı. Genel olarak, ekspresyonel değişiklikler 5 μg ml-1'de 7 :0, 5 μg ml - 1'de 9:0 veya 50 μg ml-1'de farnesol ile muameleden sonra benzerdi ( Şek. 4). ALS3 (aglütinin benzeri protein 3), ECE1 (HWP2 olarak da bilinen hiphaya özgü protein ), HWP1 ( ECE2 olarak da bilinen hiphal hücre duvarı proteini ), ve UME6 (filamana özgü düzenleyici), 7:0, 9:0 ve farnesol tarafından bastırılmıştır. Örneğin, 9:0 (en aktif) ALS3'ü 25,5 kat, ECE1'i 93 kat, HWP1'i 17,2 kat ve UME6'yı 7,9 kat aşağı regüle ederken, farnesol bu genleri 3,5, 11.4, Sırasıyla 3.0 ve 2.7 kat. Biyofilm inhibisyonu için gözlemlendiği gibi (Şek. 1), 5 μg ml -1'de 9:0'ın gen ekspresyonu üzerindeki etkisi, 50 μg ml -1'de farnesolün etkisinden önemli ölçüde daha büyüktü (Şek. 4A). Öte yandan, UCF1'in ifadesi 7:0, 9:0 veya farnesol tarafından yukarı regüle edildi (Şek. 4A) UCF1 , filamentli büyümede pozitif olarak yukarı regüle edilirken (Bahn ve diğerleri , 2007 ).
              [IMG2=JSON][][/IMG2]
              4
              Yağ asitleri veya farnesol ile veya bunlar olmadan muamele edilen C. albicans hücrelerinin nispi transkripsiyonel profilleri ve C. albicans'ta yağ asidi ile ilişkili işlemlerin özeti . C. albicans , 50 μg ml -1'de farnesol, 5 μg ml -1'de heptanoik asit (7:0) veya 5 μg ml -1'de nonanoik asit (9:0) ile birlikte veya onsuz çalkalanmadan 6 saat süreyle inkübe edildi. Transkripsiyon profilleri qRT-PCR (A) ile elde edildi. Katlama değişiklikleri, muamele edilmiş ve muamele edilmemiş C. albicans'ın transkripsiyonlarındaki değişiklikleri temsil eder . RDN18 bir temizlik geniydi. qRT-PCR sonuçlarının Venn şeması (B). Deney iki kopya halinde gerçekleştirilmiştir (gen başına altı qRT-PCR reaksiyonu gerçekleştirilmiştir). *P < 0.05 ve tedavi edilmeyen kontroller (Hiçbiri). → gen ekspresyonunun indüklenmesini veya bir fenotipin uyarılmasını gösterir ve ⊥ , gen ekspresyonunun baskılanmasını veya bir fenotipin baskılanmasını gösterir. C. albicans'a (C) karşı antibiyofilm aktivitesi sergileyen orta zincirli yağ asitleri, farnesol ve farnesol benzeri bileşiklerin kimyasal yapıları .

              Ek olarak, ALS1'in (aglütinin benzeri protein 1) ifadesi 7:0 ve 9:0 ile hafifçe inhibe edildi, ancak farnesolden etkilenmedi ve YWP1'in (maya formundaki duvar proteini 1) ifadesi 7 ile yukarı regüle edildi: 0 ve 9:0. Ayrıca, CSH1'in (hücre yüzeyi hidrofobisite proteini 1) ekspresyonu, farnesol tarafından 2,8 kat yukarı regüle edildi, ancak 7:0 veya 9:0'dan etkilenmedi. Diğer biyofilm ve hipha ile ilgili genlerin ifadeleri ( ADH5 , CDR4, CHK1, CSH1, CYR1, DPP3, EFG1, ERG1, ERG11, FKS1, GST3, HGC1, HGT10, IFD6, RBT5, TPO2, TUP1, YHB1 ve ZAP1 ) DPP3 (farnesol pirofosfataz geni) ve CYR1(olası bir farnesol bağlayıcı protein) 7:0, 9:0 veya farnesolden etkilenmemiştir. ERG2, ERG3, ERG4, ERG5, ERG6, ERG9, ERG10, ERG20 ve ERG24 gibi sterol biyosentez yolundaki dokuz ERG geninin daha ekspresyonu , bu durumda 9:0'dan etkilenmedi (Şekil S2 ). Birlikte ele alındığında, qRT-PCR 7:0, 9:0 ve farnesol biyofilm ve hif ile ilgili genleri (yani ALS3 , ECE1, HWP1 ve UME6 ) önemli ölçüde aşağı regüle etti ve biyofilm ile ilgili genleri UCF1 ve YWP1 yukarı regüle etti ( İncir. 4B). Nonanoik asit (9:0) bir C. elegans nematodunda C. albicans virülansını minimum sitotoksisite ile azalttı


              Ayrıca nonanoik asidin (9:0) , memeli modellerine kabul edilen bir alternatif olan bir C. elegans nematod modelinde C. albicans virülansını etkileyip etkilemediğini de inceledik (Tampakakis ve diğerleri , 2008 ). C. albicans'ın hif formu , nematodun kütikülünü ölümcül bir şekilde deler (Pukkila-Worley ve diğerleri , 2009 ). Bu modelde, enfeksiyondan 5 ve 7 gün sonra C. albicans %85 - 95 ölüme (%5-15 sağkalım) neden olmuştur, ancak 1, 2 veya 5 µg ml- 1'de nonanoik asit varlığı C. elegans'ı korumuştur ( %50-80 sağkalım) (Şekil S1 A). Ayrıca, enfekte olmayan C. elegans'ta, nonanoik asit 100 µg ml -1'e kadar olan konsantrasyonlarda toksik değildi (Şekil S1 B), nonanoik asit ise C. albicans'ın hiphal ve biyofilm büyümesini inhibe ederek C. elegans'ın hayatta kalmasını kurtardı (Şekil S1 C).

              Git: Tartışma


              Biyofilmler, geleneksel mantar önleyicilere veya antibiyotiklere direnç sağlar ve bu nedenle insan sağlığı için ciddi bir tehdit oluşturur. Yağ asitlerinin yüksek konsantrasyonlarda spesifik olmayan geniş aralıklı antimikrobiyal aktivitelere sahip olduğu bir süredir bilinmesine rağmen (Desbois ve Smith, 2010 ; Yoon ve diğerleri , 2018 ), MIC'lerinin çok altındaki konsantrasyonlarda antibiyofilm ve antivirülans etkileri olmuştur. görünüşte gözden kaçmıştır (Kumar ve diğerleri , 2020 ). Bu çalışma, birkaç µg ml -1 konsantrasyonda altı orta zincirli doymuş yağ asidinin C. albicans'ı baskıladığını ilk kez göstermektedir.hif büyümesini ve hücre agregasyonunu inhibe ederek ve mantar virülansını azaltarak biyofilm oluşumu. QS molekülü farnesol'e yapısal olarak benzeyen orta zincirli yağ asitlerinin C. albicans'ta farnesol ve sterol üretimine müdahale ettiğini ve bu nedenle mantar dimorfizminde fizyolojik değişikliklere, biyofilm oluşumuna ve hatta hücre ölümüne neden olduğunu bulduk.

              Kaprik asit (10:0), laurik asit (12:0) (Bergsson ve diğerleri , 2001 ), stearidonik asit (18:4), eikosapentaenoik asit (20:5) ve dokosapentaenoik gibi çeşitli yağ asitlerinin mantar önleyici aktiviteleri asit (22:5) (Thibane ve diğerleri , 2010 ), daha önce 1 mM'nin üzerindeki konsantrasyonlarda rapor edilmiştir. Bu çalışma, incelenen altı orta zincirli doymuş yağ asidinin tamamının (7:0, 8:0, 9:0, 10:0, 11:0 ve 12:0) 100-200 aralığında MIC'lerle antifungal aktivite sergilediğini göstermektedir. µg ml -1 , diğer kısa veya uzun zincirli yağ asitlerinin MIC'leri 500 µg ml -1'in üzerindeydi. 10:0'ın sitoplazma düzensizliğine neden olduğu ve bunun muhtemelen hücre içi hidrostatik turgor basıncındaki değişikliklerden kaynaklandığı bildirilmiştir (Bergsson ve diğerleri , 2001 ). Başka bir çalışmada, 18:4, 20:5 ve 22:5, muhtemelen oksidatif stresi artırarak mitokondriyal metabolizmayı inhibe etti (Thibane ve diğerleri , 2010 ). Mevcut sonuç, orta zincirli yağ asitlerinin yüksek konsantrasyonlarda (Tablo S1 ) antifungal etkilerinin muhtemelen sterol üretiminin inhibisyonundan kaynaklandığını göstermektedir (Şekil 1). 3B), hücre duvarı sentezini engelleyebilir.

              Farnesolün , ROS (reaktif oksijen türleri) birikimi, mitokondriyal bozulma ve kaspaz aktivasyonu yoluyla C. albicans'ta apoptozu indüklediği bildirilmiştir (Shirtliff ve diğerleri , 2009 ). Farnesol üzerine on yıldan fazla bir süredir devam eden yoğun araştırmalara rağmen, C. albicans hücrelerinin farnesolü nasıl algıladığı veya farnesolün biyolojik etkilerini nasıl uyguladığı açık değildir (Polke ve diğerleri , 2018 ). Sonuçlarımız (Şek. 3B) yüksek konsantrasyonlarda (> 100 µg ml -1 ) farnesolün mantar hücresi ölümüne yol açan ergosterol ve temel hücre zarı bileşeninin üretimini engellediğini öne sürer. İlginç bir şekilde, orta zincirli yağ asitleri tarafından sterol üretiminin inhibisyonu, ergosterol biyosentezi için gerekli olan 4-α-sterol demetilazı ( ERG11 geni tarafından kodlanan) inhibe eden ticari antifungal azollerin etki mekanizmasını andırıyordu. Azole dirençli Candida türleri enzim modifikasyonu, sterol alımı ve genetik mutasyon nedeniyle geliştirilmiş olsa da (Whaley ve ark ., 2016 ), orta zincirli yağ asitleri C. albicans'ın virülans özelliklerini inhibe etmiştir.sadece birkaç µg ml- 1 alt-inhibitör konsantrasyonlarında biyofilm .

              QS'yi bozan enzimler veya QS inhibitörleri kullanılarak QS sinyalinin karışması, mikrobiyal enfeksiyonları ve biyofilm oluşumunu kontrol etmenin bir yolu olarak geniş çapta önerilmiştir (Zhang ve Dong, 2004 ; Kalia, 2013 ; Grandclement ve diğerleri , 2016 ). Örneğin, deniz kırmızı alg Delisea pulchra tarafından üretilen halojenli furanonlar , birkaç Gram-negatif bakteride N -açillenmiş homoserin lakton (AHL) düzenleyici sistemi bozar (Rasmussen ve diğerleri , 2000 ). Pirinç, domates, soya fasulyesi ve Medicago truncatula gibi bitkiler de AHL aktivitelerini taklit eden maddeler üretebilir (Teplitski ve ark .,2000 ; Koh ve diğerleri , 2013 ). C. albicans'ta birkaç QS müdahale eden bileşik de rapor edilmiştir . Örneğin, kersetin (bir flavonoid), muhtemelen adenilat siklaz aktivitesini inhibe ederek, farnesol bağımlı biyofilm oluşumunu inhibe ettiği bulunmuştur (Singh ve diğerleri , 2015 ). Bir çalışmada, dört azol antifungal, farnesol üretimini arttırdı (Hornby ve Nickerson, 2004 ) ve diğerinde, çeşitli doğal ve sentetik farnesol analogları sentezlendi ve farnesol aktivitesine sahip olduğu bulundu (Shchepin ve diğerleri , 2003 ).). İlginç bir şekilde, linoleik asidin bir metaboliti olan (R)-3-hidroksitetradekanoik asit, C. albicans'ta farnesol kaynaklı biyofilm oluşumunun inhibisyonunu tersine çevirebilmiştir (Nigam ve diğerleri , 2011 ), bu da yağ asitleri ve yağ asidi- farnesol'e yapısal olarak benzeyen benzer bileşikler, farnesol kaynaklı QS sinyallemesine müdahale edebilir (Şekil 1a). 4C).

              Bu çalışma, orta zincirli yağ asitlerinin QS molekülü farnesolü taklit ettiğini ileri sürmektedir (Şekil 1a). 4C), altı kanıt satırıyla belirtildiği gibi, (i) yapısal benzerlikler, (ii) hifal büyümesinin inhibisyonu, (iii) biyofilm oluşumunun inhibisyonu, (iv) farnesol üretiminin inhibisyonu, (v) sterol üretiminin inhibisyonu ve (vi) ) orta zincirli yağ asitleri ve farnesolün aktivitelerini gösteren gen ifadeleri üzerindeki etkileri benzerdir.

              Orta zincirli yağ asitleri ve farnesolün zincir uzunlukları, farnesol yapısından üç dal ve üç çift bağ dışında benzerdir (Şekil 1a). 4C). Çift bağlı daha kısa veya uzun zincirli yağ asitlerinin daha zayıf antibiyofilm etkileri olduğundan, 8, 9 veya 10 karbon atomu içeren karbon zincirlerinin antibiyofilm aktivitesi için optimal olduğu görülmektedir (Tablo S1 ). Geraniol (Dalleau ve diğerleri , 2008 ), sitral (Silva Cde ve diğerleri ., 2008 ) ve hepsi 10 karbon atomuna sahip olan nerolidol (Curvelo ve diğerleri , 2014 ) ve linanool gibi birkaç farnesol benzeri bileşikten beri ( 15'e sahip olan Hsu ve diğerleri , 2013 ), C. albicans'a karşı antibiyofilm aktivitesine sahip olduğu gösterilmiştir.Orta zincirli yağ asitlerinin yapısal modifikasyonlarının etkileri üzerine yapılan çalışmaların, çok daha gelişmiş antifungal ve antibiyofilm aktivitelerine sahip moleküllerin tanımlanmasıyla sonuçlanabileceği görülmektedir.

              İlginç bir şekilde, qRT-PCR çalışmaları, hif ve biyofilm ile ilgili birkaç genin ( ALS3 , ECE1 , HWP1 , UCF1 ve UME6 ) ekspresyonlarının C. albicans hücrelerinde aynı anda 7:0, 9:0 veya farnesol ile değiştirildiğini göstermiştir (Şek. . 4A). Spesifik olarak, ALS3 , ECE1 , HWP1 ve UME6 önemli ölçüde aşağı regüle edildi ve UCF1 önemli ölçüde yukarı regüle edildi (Şekil 1a). 4A). ALS3 çok işlevli bir yapışmadır (Phan ve diğerleri , 2007 ; Liu ve Filler, 2011 ) ve ECE1 (HWP2 olarak da adlandırılır ) ve HWP1 ( ECE2 olarak da adlandırılır ) hif gelişimi için gereklidir ve ifadelerinin hücre uzaması ile ilişkili olduğu gösterilmiştir. , biyofilm oluşumu (Nobile ve diğerleri , 2006a , 2006b , 2006a , 2006b ) ve hücreler arası yapışma (Orsi ve diğerleri , 2014 ). UME6 , C. albicans'ın filamente özgü bir düzenleyicisidirhiphal uzantısı (Banerjee ve diğerleri , 2008 ) ve biyofilm oluşumunu arttırır (Banerjee ve diğerleri , 2013 ). Bu nedenle, 7:0, 9:0 veya farnesol tarafından hif büyümesi ve biyofilm oluşumunun baskılanması, en azından kısmen bu hifa spesifik genlerin aşağı regülasyonlarıyla açıklanabilir gibi görünmektedir. UCF1'in cAMP tarafından yukarı regüle edildiği bildirilse de (Bahn ve diğerleri , 2007 ) ve bu çalışmada 7:0, 9:0 veya farnesol tarafından yukarı regüle edildiği bildirilmişti (Şekil 1a). 4A ve B), C. albicans'ın 10 mM'ye kadar konsantrasyonlarda cAMP ile işlenmesi, hif büyümesini veya biyofilm oluşumunu tamamlamadı (veriler gösterilmemiştir).

              Farnesol üretiminin orta zincirli yağ asitleri (7:0, 9:0 veya 12:0) tarafından gözlenen inhibisyonu, ancak 16:0 ile değil, biraz beklenmedik bir durumdu (Şek. 3 A). Farnesol düzenleyici genlerin ( CYR1 , DPP3 , EFG1 , ERG1 , ERG2, ERG3, ERG4, ERG5, ERG6, ERG9, ERG10, ERG11, ERG20 ve ERG24 ) ekspresyonları doğrudan etkilenmediği için bu etkiden sorumlu mekanizma net değildir. bu üç yağ asidi (Şek. 4Ave Şekil S2 ). C. albicans'ın bu yağ asitlerini farnesol ile karıştırabileceğini veya orta zincirli yağ asitlerinin QS ile etkileşime girebileceğini tahmin ediyoruz . C. albicans'ın uzun zincirli yağ asitlerini CoA esterlerine dönüştürebilen yağ açil-CoA sentetazını (CaFaa4p) içerdiği daha önce bildirilmişti (Black ve DiRusso, 2003 ). Mantar hücrelerinin orta zincirli yağ asitlerini nasıl algıladığını ve gen ekspresyonunu nasıl düzenlediğini belirlemek için ek çalışmalara ihtiyaç vardır. Ek olarak, transkriptom sonuçlarımız, C. albicans hücrelerinde oleik asit (18:1) ve linoleik asit (18:2) tarafından indüklenen ekspresyonel değişikliklerle geniş ölçüde eşleşir . Oleik asidin (18:1) ALS1, ALS3, ERG11, SAP2, HWP1, CST20 ifadelerini aşağı regüle ettiği bulundu.ve RAS1'i iki kattan fazla artırırken (Muthamil ve diğerleri , 2020 ), linoleik asit (18:2) CHT2, ECE1, HWP1, RAS1, RBT1 ve UME6'yı aşağı regüle etti (Kim ve diğerleri , 2020 ). Sonuçlarımız ayrıca farnesol tarafından indüklenen ekspresyonel değişikliklerin hifa spesifik HWP1'in ekspresyonunu baskıladığına dair önceki bir raporu da desteklemektedir (Ramage ve diğerleri , 2002 ). Ayrıca, yapısal olarak orta zincirli yağ asitlerine benzer bir bitki metaboliti olan linalool (C 10 H 18 O), C. albicans tarafından hif büyümesini ve biyofilm oluşumunu inhibe etti.Bu çalışmada gözlemlenen 7:0, 9:0 veya farnesol tarafından indüklenen gen ekspresyonu değişikliklerine benzeyen ALS3, HWP1, UME6, HGC1 ve EED1 (Hsu ve diğerleri , 2013 ) ifadelerini aşağı doğru düzenleyerek ( İncir. 4A). Bu nedenle, bitkiler ve hayvanlar, C. albicans hiphal büyümesini ve biyofilm oluşumunu kontrol etmek ve virülansını azaltmak için hem yağ asitlerini hem de yağ asidi benzeri bileşikleri kullanabilirler.

              Orta zincirli yağ asitleri memeli sütünde, hurma çekirdeği yağında ve hindistancevizi yağında bulunur ve gıdalarda, ilaçlarda ve kozmetikte yaygın olarak kullanılır. 4C) (Traul ve diğerleri , 2000 ). İki insan lösemik hücre hattında yürütülen yağ asitlerinin toksisite sıralamaları, kısa ve orta zincirli doymuş yağ asitlerinin uzun zincirli yağ asitlerinden çok daha az toksik olduğunu göstermiştir (Lima ve diğerleri , 2002 ). Birkaç yazar, yağ asitlerinin yüksek konsantrasyonlarda antimikrobiyal aktivite ve alt-inhibitör konsantrasyonlarda antibiyofilm aktivite gösterebileceğini bildirmiştir (Kumar ve diğerleri , 2020 ).). Mantar önleyici etkinliği arttırmak için, kombinatoryal terapi ve yağ asitleri aynı anda veya kombinasyon halinde kullanılabilir. Lipozomlar veya yeni nanotaşıyıcı sistemler kullanılarak tek başına veya kombinasyon halinde verilen yağ asitlerinin ökaryotları mantar enfeksiyonlarından koruyabileceğini tahmin ediyoruz (Kumar ve diğerleri , 2020 ).

              Sonuç olarak, ilaca dirençli mikroorganizmaların hızla ortaya çıkması, yeni antifungallerin ve antibiyotiklerin geliştirilmesine neden olmuştur. Bu çalışma, altı orta zincirli yağ asidinin QS molekülü farnesolü taklit ettiğini ve C. albicans'ta antibiyofilm ve anti-hifal aktivitelere sahip olduğunu göstermektedir . Yağ asitleri çoğu organizmada yaygındır ve bulgularımız, bunların C. albicans'a karşı savunma amacıyla kullanılabileceğini ve çekirdek algılama sistemine müdahale edebileceğini göstermektedir. En aktif yağ asidi olan nonanoik asit (9:0) ayrıca Caenorhabditis elegans'ımızda C. albicans virülansını in vivo olarak etkili bir şekilde azalttı (Şekil S1) modellenmiş ve yalnızca minimal sitotoksisite sergilemiştir. Mevcut çalışmanın çeşitli biyoteknolojik uygulamaları, tıbbi cihazların yağ asitleri ile kaplanması, polimer veya nanoparçacık yağ asitlerinin kompozitlerinin sentezlenmesi, yağ asitleri ile lipozom veya emülsiyon üretilmesi ve alternatif olarak yağ asitlerinin geliştirilmesi gibi patojenik biyofilmleri kontrol etme olasılığıdır. antibiyotikler veya antibiyotik adjuvanları. Tıbbi uygulamalarla ilgili olarak, bulgularımız, orta zincirli yağ asitlerinin, Candida türlerine karşı güçlü antibiyofilm ve anti-hifal oluşturucu ajanların tasarımı için bir temel sunduğunu göstermektedir.

              Git: deneysel prosedürler

              Suşlar, kimyasallar ve kültür materyalleri


              Flukonazole dirençli C. albicansDAY185 ve ATCC 10231 suşları bu çalışmada kullanılmış ve patates dekstroz agar (PDA) ve patates dekstroz suyu (PDB) içinde kültürlenmiştir. Tüm deneyler 37°C'de gerçekleştirilmiştir. Yirmi dört yağ asidi, yani bütanoik asit (4:0), pentanoik asit (5:0), heksanoik asit (6:0), heptanoik asit (7:0), oktanoik asit (8:0), nonanoik asit (9 :0), dekanoik asit (10:0), undekanoik asit (11:0), laurik asit (12:0), miristik asit (14:0), miristoleik asit (14:1), palmitik asit (16:0 ), palmitoleik asit (16:1), heptadekanoik asit (17:0), stearik asit (18:0), oleik asit (18:1), elaidik asit (18:1), petroselinik asit (18:1), linoleik asit (18:2), konjuge linoleik asit (18:2), linolenik asit (18:3), araşidonik asit (20:4), eikosapentaenoik asit (20:5), behenik asit (22:0), erusik asit (22:1), dokosaheksaenoik asit (22:6), trikozanoik asit (23:0), heksakosanoik asit (26:0) ve oktakozanoik asit (C28:0), Sigma-Aldrich'ten (St. Louis, ABD) veya TCI'den (Tokyo, Japonya) satın alındı. Dimetil sülfoksit (DMSO, Sigma-Aldrich, St. Louis, MO) suda çözünen butanoik asit dışındaki tüm yağ asitlerini çözmek için çözücü olarak kullanıldı. Negatif kontrol olarak DMSO (%0.1 v/v) kullanıldı ve < %0.1'de bakteri üremesini veya biyofilm oluşumunu etkilemedi.

              Planktonik hücre büyümeleri ve bulanıklıklar, 600 nm'de bir Optizen 2120UV spektrofotometre (Mecasys, Daejeon, Kore) kullanılarak ölçüldü. MIC, planktonik hücre büyümesini %80 oranında inhibe eden ve ayrıca koloni sayımı ile teyit edilen en düşük konsantrasyon olarak tanımlandı. Kristal menekşe kullanılarak biyofilm tahlili


              C. albicans tarafından biyofilm oluşumu , daha önce tarif edildiği gibi 96 oyuklu polistiren plakalar (SPL Life Sciences, Kore) üzerinde üretildi (Lee ve diğerleri , 2011 ). Kısaca, iki günlük tek bir koloni 25 ml PDB ortamına aşılandı ve gece boyunca 37°C'de inkübe edildi. OD 600 nm'de 0.1 başlangıç ​​bulanıklığında gecelik kültürler (˜ 10 5 CFU ml -1), 96 oyuklu polistiren plakalarda yağ asitleri içeren veya içermeyen PDB'ye (son hacim 300 ul) aşılandı ve 37°C'de çalkalanmadan 24 saat inkübe edildi. 96 oyuklu plakalara yapışan biyofilm hücreleri, planktonik hücreler üç kez distile su ile yıkandıktan sonra 20 dakika boyunca %0.1 kristal viyole Sigma-Aldrich (St. Louis, ABD) ile boyandı, ardından tekrar tekrar distile su ile üç kez yıkandı ve yeniden süspanse edildi. %95 etanol içinde. Biyofilm oluşumunu ölçmek için plakalar 570 nm'de okundu ve sonuçlar en az altı tekrarın ortalaması olarak sunuldu. İnhibisyon oranı yüzdesi, bağıl biyofilm oluşumunu temsil eder (işlenmemiş kontrolün kimyasal/biyofilm oluşumu ile 100x biyofilm oluşumu). Konfokal mikroskopi ile biyofilm gözlemleri


              C. albicans tarafından biyofilm oluşumu, yağ asitleri veya farnesol içeren veya içermeyen 96 oyuklu polistiren plakalar üzerinde 24 saat çalkalanmadan geliştirildi. Planktonik hücreler daha sonra üç kez damıtılmış su ile yıkanarak çıkarıldı ve biyofilmler karboksifloresein diasetat süksinimidil ester (Invitrogen, Molecular Probes, Eugene, OR, ABD) ile boyandı. Plakanın altları daha sonra bir konfokal lazer mikroskobu (Nikon Eclipse Ti, Tokyo, Japonya) altında 488 nm Ar lazer (emisyon 500 ila 550 nm) kullanılarak görselleştirildi. Biyofilm yapılarını ölçmek için, biyohacimleri (μm 3 μm -2 ) belirlemek için COMSTAT yazılımı (Heydorn ve diğerleri , 2000 ) kullanıldı.), ortalama biyofilm kalınlıkları (μm) ve alt tabaka kaplamaları (%). Her deneysel koşul altında iki bağımsız kültür yapıldı ve en az 10 rastgele pozisyon test edildi. Katı besiyerinde C. albicans koloni morfolojileri


              Katı agar plakaları üzerinde C. albicans'ın koloni morfolojisini incelemek için , taze hazırlanmış bir C. albicans gliserol stoğu, yağ asitleri (2 μg ml -1 ) veya farnesol (100 μg ml -1 ) ile desteklenmiş veya içermeyen PDA plakalarına ekildi. . Plakalar daha sonra 6 gün boyunca 37°C'de inkübe edildi ve bir iRiS™ Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems, Anyang, Kore) kullanılarak koloni morfolojilerindeki değişiklikler gözlemlendi. Sıvı ortamda hif ve hücre toplanması


              Hifal büyümesini ve hücre agregasyonunu araştırmak için, C. albicans hücreleri, yağ asitleri (2 μg ml -1 ) veya farnesol ( 100 μg ml -1 ) ve 37°C'de 24 saat çalkalanmadan inkübe edildi. 24 saat inkübasyondan sonra, kümelenmiş hücreler ve hif büyümeleri , 4x ve 10x büyütmelerde iRiS TM Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems) kullanılarak parlak alanda görselleştirildi. En az dört bağımsız deney yapılmıştır. Taramalı elektron mikroskobu (SEM) ile biyofilm ve hif oluşumunun analizi


              Biyofilm ve hif oluşumunu gözlemlemek için SEM, daha önce tarif edildiği gibi kullanıldı (Kim ve diğerleri , 2016 ). Kısaca, bir naylon membran 0,4 x 0,4 cm'lik parçalar halinde kesildi, yağ asitleri (2 μg ml - 1 ) veya farnesol (100 μg ml- 1 ) ile veya bunlar olmadan büyütülen C. albicans içeren 96 oyuklu plakalara yerleştirildi ve inkübe edildi. 37°C'de 24 saat. Membranlara yapışan hücreler, 24 saat boyunca bir glutaraldehit (%2.5) ve formaldehit (%2) ile sabitlendi, OsO 4 kullanılarak sonradan sabitlendive bir etanol serisi (50, 70, 80, 90, 95 ve %100) ve izoamil asetat kullanılarak kurutuldu. Kritik noktada kurutmadan sonra, filtrelerdeki hücreler paladyum/altın ile püskürtmeyle kaplandı ve 15kV voltajda bir S-4100 taramalı elektron mikroskobu (Hitachi, Tokyo, Japonya) altında görüntülendi. Yüksek performanslı sıvı kromatografisi (HPLC) ile Farnesol testi


              C. albicans'ta farnesol üretimi, daha önce tarif edildiği gibi (Hornby ve diğerleri , 2001 ) bir ters fazlı HPLC kolonu (4.6 × 250 mm; Agilent ZORBAX Eclipse) ile donatılmış bir HPLC ünitesi (YL9100HPLC, Young Lin, Anyang, Kore) kullanılarak ölçülmüştür. XDB-C18). Kullanılan mobil faz metanol (20:80, v/v) içeren suydu ve akış hızı 1.0 ml dk -1 idi . Eluatlar, farnesol için 210 nm'de izlendi (tutma süresi 17 dakika). Mantar, 250 rpm'de çalkalanarak 37°C'de 24 saat boyunca yağ asidi içeren ve içermeyen PDB'de kültürlendi. Farnesol, 20 ml C. albicans kültüründen 10 ml n-heksan ile 5 dakika vortekslenerek ekstrakte edildi. Heksan fraksiyonu daha sonra kurutuldu ve 0.5 ml metanol içinde çözüldü. Trans, standart olarak Sigma-Aldrich'ten (St. Louis, ABD) satın alınan trans -farnesol kullanıldı. Filipinli sterol tahlili


              C. albicans'ta sterol üretimi, daha önce tarif edildiği gibi araştırıldı (Liu ve diğerleri , 2017 ). Kısaca, hücreler (˜ 105 CFU ml -1 ) , 2 ml test tüplerinde PDB et suyuna aşılandı ve yağ asitleri (10 μg ml- 1 ) veya farnesol varlığında veya yokluğunda çalkalanmadan 37°C'de 1 saat inkübe edildi. (50 veya 100 μg ml -1 ). İnkübasyondan sonra hücreler filipin (Sigma-Aldrich, St. Louis, ABD, 25 µg ml- 1 son konsantrasyon) ile oda sıcaklığında 30 dakika boyunca boyandı. Hücreler optik mikroskopi (iRiS™ Dijital Hücre Görüntüleme Sistemi) ile analiz edildi. Transkriptomik çalışmalar için RNA izolasyonu


              Transkriptomik analizler için, OD 600'de 0.1'lik bir başlangıç ​​bulanıklığında (˜ 105 CFU ml -1 ) 10 ml C. albicans , 250 ml Erlenmeyer şişelerinde PDB et suyuna aşılandı ve 6 saat boyunca 37°C'de çalkalanmadan inkübe edildi. yağ asitlerinin (5 μg ml -1 ) veya farnesolün (20 μg ml -1 ) varlığı veya yokluğu. RNA bozulmasını önlemek için, inkübasyondan hemen sonra hücrelere RNase inhibitörü (RNAlater, Ambion, TX, ABD) eklendi. Toplam RNA, sıcak asidik fenol yöntemi kullanılarak izole edildi (Amin-ul Mannan ve diğerleri , 2009 ) ve RNA, bir Qiagen RNeasy mini Kiti (Valencia, CA, ABD) kullanılarak saflaştırıldı. Kantitatif Gerçek Zamanlı PCR (qRT-PCR)


              Hifa ile ilişkili genlerin ( ADH5 , ALS1, ALS3, CDR4, CHK1, CSH1, CYR1, DPP3, ECE1, EFG1, ERG1, ERG2, ERG3, ERG4, ERG5, ERG6, ERG9, ERG10, ERG11, ERG20, ERG24, FKS1, GST3, HGC1, HGT10, HWP1, IFD6, RBT5, TPO2, TUP1, UCF1, UME6, YHB1, YWP1 ve ZAP1 ) , qRT-PCR yapıldı. qRT-PCR için kullanılan spesifik primerler ve temizlik geni ( RDN18 ) Tablo S2'de listelenmiştir . RDN18'in ifadesi, yağ asitleri veya farnesolden etkilenmedi. Kullanılan qRT-PCR yöntemi, Kim ve diğerleri , 2016 (Kim ve diğerleri, 2016 ) tarafından açıklandığı gibidir .) ve SYBR Green ana karışımı (Applied Biosystems, Foster City, ABD) ve bir ABI StepOne Real-Time PCR Sistemi (Applied Biosystems) kullanılarak yapıldı. En az iki bağımsız kültür kullanıldı. Nematod modelinde antivirülans ve toksisite deneyleri


              Yağ asitlerinin C. albicans'ın virülansı üzerindeki etkilerini araştırmak için C. elegans suşu fer-15(b26) kullandık ; fem-1(hc17) , daha önce açıklandığı gibi (Lee ve diğerleri , 2018 ). Kısaca, senkronize yetişkin nematodlar deneylere başlamadan önce M9 tamponu ile yıkandı ve nonanoik asit (0, 1) içeren veya içermeyen PDB:M9 (20:80) ortamı (200 µl) içeren 96 oyuklu plakaların her bir oyuğuna yaklaşık 30 solucan eklendi. , 2 ve 5 µg ml -1 ). Ayrıca, işlem görmemiş kontrol ve yağ asidi ile işlem görmüş C. albicans hücreleri (˜ 105 CFU ml -1 )) solucan içeren kuyulara eklendi. Plakalar daha sonra 5 gün boyunca 25°C'de çalkalanmadan inkübe edildi. Kimyasal toksisite deneyleri için, M9 tamponu içeren 96 kuyulu bir plakanın her kuyucuğuna yaklaşık 30 enfekte olmayan solucan pipetlendi ve C olmadan 0, 10, 20, 50 veya 100 µg ml -1'lik nihai konsantrasyonlara nonanoik asit ilave edildi. albicans . Plakalar daha sonra 7 gün boyunca 25°C'de çalkalanmadan inkübe edildi. Üç kopya halinde üç bağımsız deney yapıldı. Sonuçlar, 5 ve 7 gün süreyle inkübasyondan sonra platin tele dokunmaya verilen yanıtlarla belirlendiği üzere canlı solucanların (hayatta kalma) yüzdeleri olarak ifade edilir. Gözlemler, bir iRiS™ Dijital Hücre Görüntüleme Sistemi (Logos Bio Systems, Anyang, Kore) kullanılarak yapılmıştır. istatistiksel analiz


              Testler için replikasyon numaraları yukarıda verilmiştir ve sonuçlar ortalama ± standart sapma olarak ifade edilmiştir. İstatistiksel analiz, tek yönlü ANOVA ve ardından spss versiyon 23 (SPSS, Chicago, IL, ABD) kullanılarak Dunnett testi ile yapıldı. < 0.05'lik P değerleri anlamlı kabul edildi ve yıldız işaretleri, işlenmiş ve işlenmemiş numuneler arasında önemli farklılıklar olduğunu gösteriyor.

              Git: çıkar çatışması


              Hiçbiri ilan edilmedi.


              Git: Destek Bilgisi


              Tablo S1. Çeşitli yağ asitlerinin C. albicans biyofilm oluşumu ve planktonik büyüme üzerindeki inhibitör etkileri . Yağ asitlerinin PDB ortamında iki C. albicans suşuna (DAY185 ve ATCC 10231) karşı antibiyofilm aktivitesi, 96 oyuklu plakalarda 24 saat kültürden sonra belirlendi. Biyofilm tahlili için her bir yağ asidi 10 μg ml -1'de kullanıldı . C. albicans DAY185'in planktonik hücrelerine karşı her bir yağ asidinin MIC'leri gösterilmektedir. Düşük MIC'li aktif yağ asitleri mavi renkle gösterilmiştir.

              Tablo S2. qRT-PCR için kullanılan primer dizileri.

              Şekil S1. Nonanoik asidin (9:0) C. albicans ile enfekte C. elegans üzerindeki etkileri . Nonanoik asit varlığında 5 veya 7 gün boyunca C. albicans'a maruz kaldıktan sonra nematod sağkalımı (A). Nonanoik asidin toksisitesi, enfekte olmayan nematodların 5 veya 7 gün süreyle işlenmesiyle araştırıldı (B). Nonanoik asit , C. albicans'ın (C) hiphal büyümesini engelleyerek C. elegans'ın hayatta kalmasını kurtardı. Hiçbiri, tedavi edilmeyen kontrolleri gösterir. Solucan sağkalımı harekete dayalı olarak belirlendi. * P < 0.05, tedavi edilmeyen kontrollere karşı.

              Şekil S2. 5 µg ml -1'de nonanoik asit (9:0) ile muamele edilmiş C. albicans hücrelerinde ergosterol biyosentezi ile ilgili genlerin nispi transkripsiyonel profilleri . C. albicans , nonanoik asit (9:0) ile veya onsuz 5 µg ml -1'de 6 saat çalkalanmadan inkübe edildi. Transkripsiyon profilleri qRT-PCR ile elde edildi. RDN18 bir temizlik geniydi.
              Ek veri dosyası için buraya tıklayın. (469K, belge)
              Git: Teşekkür


              Bu araştırma, Eğitim Bakanlığı (2018R1D1A3B07040699 - J.‐H. Lee, 2019R1C1C1008329 - Y.‐G. Kim) tarafından finanse edilen NRF aracılığıyla Temel Bilim Araştırma Programından sağlanan hibelerle desteklenmiştir. Gıda, Tarım ve Ormancılıkta Teknoloji (IPET), Tarım, Gıda ve Köy İşleri Bakanlığı (MAFRA) (119034-3) tarafından finanse edilen Yenilikçi Gıda Teknolojisi Geliştirme Programı aracılığıyla ve NRF aracılığıyla Öncelikli Araştırma Merkezleri Programından sağlanan hibe ile Eğitim Bakanlığı tarafından finanse edilmektedir (2014R1A6A1031189).

              Git: notlar


              Mikrobiyal Biyoteknoloji (2021) 14 ( 4 ), 1353–1366 [ Google Akademik ]


              Finansman bilgisi Bu araştırma, Eğitim Bakanlığı (2018R1D1A3B07040699 - J.‐H. Lee, 2019R1C1C1008329 - Y.‐G. Kim) tarafından finanse edilen NRF aracılığıyla Temel Bilimler Araştırma Programından, Kore Planlama Enstitüsü ve Gıda, Tarım ve Ormancılıkta Teknoloji Değerlendirmesi (IPET), Tarım, Gıda ve Köy İşleri Bakanlığı (MAFRA) (119034-3) tarafından finanse edilen Yenilikçi Gıda Teknolojisi Geliştirme Programı aracılığıyla ve Öncelikli Araştırma Merkezleri Programı tarafından sağlanan hibe ile Eğitim Bakanlığı tarafından finanse edilen NRF (2014R1A6A1031189).


              Git: Referanslar
              • Amin-ul Mannan, M. , Sharma, S. ve Ganesan, K. (2009) İnatçı maya hücrelerinden toplam RNA izolasyonu . Anal Biyokimya 389 : 77-79. [ PubMed ] [ Google Akademik ]
              • Araujo, D. , Henriques, M. ve Silva, S. (2017) Candida türlerinin portresi biyofilm düzenleyici ağ genleri . Trendler Microbiol 25 : 62–75. [ PubMed ] [ Google Akademik ]
              • Bahn, YS , Molenda, M. , Staab, JF , Lyman, CA , Gordon, LJ ve Sundstrom, P. (2007) Candida albicans'ın morfojenik geçişleri sırasında siklik AMP-Bağımlı sinyal yolunun genom çapında transkripsiyonel profili . Ökaryot Hücre 6 : 2376-2390. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Banerjee, M., Thompson, DS, Lazzell, A., Carlisle, PL, Pierce, C., Monteagudo, C., ve diğerleri . (2008) UME6 , Candida albicans hiphal uzantısı ve virülansının yeni bir filamente özgü düzenleyicisi . Mol Biol Hücre 19 : 1354–1365. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Banerjee, M. , Uppuluri, P. , Zhao, XR , Carlisle, PL , Vipulanandan, G. , Villar, CC , ve diğerleri . (2013) Candida albicans hiphal gelişiminin önemli bir düzenleyicisi olan UME6'nın ifadesi, Hgc1 ve Sun41'e bağlı mekanizmalar yoluyla biyofilm oluşumunu arttırır . Ökaryot Hücre 12 : 224-232. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Bergsson, G., Arnfinnsson, J., Steingrimsson, O. ve Thormar, H. (2001) Candida albicans'ın yağ asitleri ve monogliseritler tarafından in vitro öldürülmesi . Antimicrob Agents Chemother 45 : 3209–3212. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Black, PN ve DiRusso, CC (2003) Eksojen uzun zincirli yağ asitlerinin transmembran hareketi: proteinler, enzimler ve vektörel esterleşme . Mikrobiol Mol Biol Rev 67 : 454-472. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Carradori, S. , Chimenti, P. , Fazzari, M. , Granese, A. ve Angiolella, L. (2016) Candida spp'ye karşı Crocus sativus türevi bileşikler tarafından antimikrobiyal aktivite, sinerjizm ve germ tüp oluşumunun inhibisyonu . J Enzim Engelleme Med Chem 31 : 189–193. [ PubMed ] [ Google Akademik ]
              • Chandra, J. , Kuhn, DM , Mukherjee, PK , Hoyer, LL , McCormick, T. ve Ghannoum, MA (2001) Mantar patojeni Candida albicans tarafından biyofilm oluşumu: geliştirme, mimari ve ilaç direnci . J Bakteriol 183 : 5385–5394. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Cui, C. , Song, S. , Yang, C. , Sun, X. , Huang, Y. , Li, K. , ve diğerleri . (2019) Burkholderia cenocepacia'da cis -2-dodekenoik asit sinyalinin yapısal bir analogu tarafından çekirdek algılama ve virülansın bozulması . Appl Environ Microbiol 85 : e00105-00119. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Curvelo, JA , Marques, AM , Barreto, AL , Romanos, MT , Portela, MB , Kaplan, MA ve Soares, RM (2014) Piper claussenianum'dan yeni bir nerolidol bakımından zengin uçucu yağ, Candida albicans biyofilmini modüle eder . J Med Microbiol 63 : 697–702. [ PubMed ] [ Google Akademik ]
              • Dalleau, S., Cateau, E., Berges, T., Berjeaud, JM ve Imbert, C. (2008) Terpenlerin Candida biyofilmlerine karşı in vitro aktivitesi . Int J Antimicrob Agents 31 : 572–576. [ PubMed ] [ Google Akademik ]
              • Davies, DG ve Marques, CNH (2009) Bir yağ asidi habercisi, mikrobiyal biyofilmlerde dağılmayı indüklemekten sorumludur . J Bakteriyol 191 : 1393–1403. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Defoirdt, T. (2018) Antivirülans tedavisi için hedefler olarak Quorum-algılama sistemleri . Trendler Microbiol 26 : 313–328. [ PubMed ] [ Google Akademik ]
              • Desbois, AP ve Smith, VJ (2010) Antibakteriyel serbest yağ asitleri: aktiviteler, etki mekanizmaları ve biyoteknolojik potansiyel . Appl Microbiol Biotechnol 85 : 1629–1642. [ PubMed ] [ Google Akademik ]
              • Donlan, RM (2002) Biyofilmler: yüzeylerde mikrobiyal yaşam . Emerg Infect Dis 8 : 881–890. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Finkel, JS ve Mitchell, AP (2011) Candida albicans biyofilm gelişiminin genetik kontrolü . Nat Rev Microbiol 9 : 109–118. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Grandclement, C. , Tannieres, M. , Morera, S. , Dessaux, Y. ve Faure, D. (2016) Nisap söndürme: doğada rol ve uygulamalı gelişmeler . FEMS Microbiol Rev 40 : 86–116. [ PubMed ] [ Google Akademik ]
              • Hall-Stoodley, L. , Costerton, JW ve Stoodley, P. (2004) Bakteriyel biyofilmler: doğal ortamdan bulaşıcı hastalıklara . Nat Rev Microbiol 2 : 95–108. [ PubMed ] [ Google Akademik ]
              • Handorf, O., Schnabel, U., Bosel, A., Weihe, T., Bekeschus, S., Graf, AC, et al . (2019) Mikrodalga kaynaklı plazma meşalesi (MiniMIP) işleminin Candida albicans biyofilmleri üzerindeki antimikrobiyal etkileri . Mikrob Biyoteknoloji 12 : 1034–1048. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Heydorn, A. , Nielsen, AT , Hentzer, M. , Sternberg, C. , Givskov, M. , Ersboll, BK , ve Molin, S. (2000) Yeni bilgisayar programı COMSTAT ile biyofilm yapılarının nicelendirilmesi . Mikrobiyoloji 146 : 2395–2407. [ PubMed ] [ Google Akademik ]
              • Hornby, JM, Jensen, EC, Lisec, AD, Tasto, JJ, Jahnke, B., Shoemaker, R., ve diğerleri . (2001) Dimorfik mantar Candida albicans'ta çekirdek algılamaya farnesol aracılık eder . Appl Environ Microbiol 67 : 2982–2992. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Hornby, JM ve Nickerson, KW (2004) Dört azol ile muamele edilmiş Candida albicans tarafından geliştirilmiş farnesol üretimi . Antimikrobiyal Ajanlar Chemother 48 : 2305–2307. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Hsu, CC , Lai, WL , Chuang, KC , Lee, MH ve Tsai, YC (2013) Candida albicans'ta linaloolün filamentli büyümeye ve biyofilm oluşumuna karşı inhibitör aktivitesi . Med Mycol 51 : 473-482. [ PubMed ] [ Google Akademik ]
              • Inoue, T. , Shingaki, R. ve Fukui, K. (2008) Dallı zincirli yağ asitleri tarafından Pseudomonas aeruginosa'nın sürü hareketliliğinin engellenmesi . FEMS Microbiol Lett 281 : 81–86. [ PubMed ] [ Google Akademik ]
              • Jabra-Rizk, MA , Meiller, TF , James, CE ve Shirtliff, ME (2006) Farnesolün Staphylococcus aureus biyofilm oluşumu ve antimikrobiyal duyarlılık üzerindeki etkisi . Antimikrobiyal Ajanlar Chemother 50 : 1463–1469. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Kalia, VC (2013) Çekirdek algılama inhibitörleri: genel bir bakış . Biotechnol Adv 31 : 224–245. [ PubMed ] [ Google Akademik ]
              • Kenar, JA , Moser, BR ve List, GR (2017) Bölüm 2 - Doğal olarak oluşan yağ asitleri: kaynak, kimya ve kullanımlar. Yağ Asitlerinde . Ahmed, MU (ed). AOCS Press, s. 23–82. [ Google Akademik ]
              • Kim, Y.G. , Lee, J.-H. , Gwon, G. , Kim, S.‐I. , Park, JG ve Lee, J. (2016) Uçucu yağlar ve öjenoller, biyofilm oluşumunu ve Escherichia coli O157:H7'nin virülansını inhibe eder . Sci Rep 6 : 36377. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Kim, Y.G. , Lee, J.-H. , Park, JG ve Lee, J. (2020) Candida albicans ve Staphylococcus aureus biyofilmlerinin kırkayak yağı ve linoleik asit ile engellenmesi . Biyolojik kirlilik 36 : 126–137 . [ PubMed ] [ Google Akademik ]
              • Kim, Y.G. , Lee, J.-H. , Raorane, CJ , Oh, ST , Park, JG ve Lee, J. (2018) Ringa yağı ve omega yağ asitleri Staphylococcus aureus biyofilm oluşumunu ve virülansını inhibe eder . Front Microbiol 9 : 1241. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Koh, CL , Sam, CK , Yin, WF , Tan, LY , Krishnan, T. , Chong, YM ve Chan, KG (2013) Anti-quorum algılama bileşiklerinin kaynakları olarak bitki kaynaklı doğal ürünler . Sensörler 13 : 6217–6228. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Kumar, P., Lee, J.-H. , Beyenal, H. ve Lee, J. (2020) Antibiyofilm ve antivirülans ajanları olarak yağ asitleri . Trendler Microbiol 28 : 753–768. [ PubMed ] [ Google Akademik ]
              • Lee, J.-H. , Cho, MH ve Lee, J. (2011) 3-Indolylasetonitril , Escherichia coli O157:H7 biyofilm oluşumunu ve Pseudomonas aeruginosa virülansını azaltır . Çevre Mikrobiol 13 : 62-73. [ PubMed ] [ Google Akademik ]
              • Lee, J.-H. , Kim, Y.‐G. , Choi, P. , Ham, J. , Park, JG ve Lee, J. (2018) 6-gingerol ve 6-shogaolün hiphal inhibisyonu nedeniyle Candida albicans'a karşı antibiyofilm ve antivirülans aktiviteleri . Front Cell Infect Microbiol 8 : 299. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Lima, TM , Kanunfre, CC , Pompeia, C. , Verlengia, R. ve Curi, R. (2002) Akış sitometrik analizi ile yağ asitlerinin Jurkat ve Raji hücreleri üzerindeki toksisitesinin sıralanması . Toksikol İn Vitro 16 : 741–747. [ PubMed ] [ Google Akademik ]
              • Liu, Y. ve Filler, SG (2011) Candida albicans als3, çok işlevli bir yapıştırıcı ve invasin . Ökaryot Hücre 10 : 168-173. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Liu, RH , Shang, ZC , Li, TX , Yang, MH ve Kong, LY (2017) Eucarobustol E'nin Candida albicans'a karşı in vitro antibiyofilm aktivitesi . Antimicrob Agents Chemother 61 : e02707–02716. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Murzyn, A. , Krasowska, A. , Stefanowicz, P. , Dziadkowiec, D. ve Łukaszewicz, M. (2010) S. boulardii tarafından salgılanan kaprik asit , C. albicans filamentli büyümeyi, yapışmayı ve biyofilm oluşumunu engeller . PLoS One 5 : e12050. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Muthamil, S. , Balasubramaniam, B. , Balamurugan, K. ve Pandian, SK (2018) Syzygium cumini'den türetilen kinik asit ve undekanoik asitin Candida spp. biyofilm ve virülans . Front Microbiol 9 : 2835. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Muthamil, S. , Prasath, KG , Priya, A. , Precilla, P. ve Pandian, SK (2020) Küresel proteomik analiz, bitki kaynaklı oleik asidin Candida albicans virülansına ve biyofilm oluşumuna karşı etki mekanizmasını deşifre eder . Sci Rep 10 : 5113. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Nickerson, KW , Atkin, AL , Hargarten, JC , Pathirana, R. ve Hasim, S. (2013) Çekirdek algılama ve mantar dimorfizmi üzerine düşünceler. Mantarların Biyokomünikasyonunda . Dordrecht, Hollanda: Springer, s. 189–204. [ Google Akademik ]
              • Nigam, S. , Ciccoli, R. , Ivanov, I. , Sczepanski, M. ve Deva, R. (2011) 3(R)-hidroksi-tetradekaenoik asit ile Candida albicans'ta çekirdek algılama mekanizması üzerine . Curr Microbiol 62 : 55–63. [ PubMed ] [ Google Akademik ]
              • Nobile, CJ, Andes, DR, Nett, JE, Smith, FJ, Yue, F., Phan, QT, et al . (2006a) Bcr1'e bağlı adezinlerin C. albicans biyofilm oluşumundaki kritik rolü in vitro ve in vivo . PLoS Pathog 2 : e63. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Nobile, CJ , Nett, JE , Andes, DR ve Mitchell, AP (2006b) Candida albicans adhesin Hwp1'in biyofilm oluşumundaki işlevi . Ökaryot Hücre 5 : 1604-1610. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Noverr, MC ve Huffnagle, GB (2004) Yağ asidi metabolitleri ile Candida albicans morfogenezinin düzenlenmesi . Immun 72'yi enfekte edin: 6206-6210. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • de Oliveira, DBC , Silva, LB , da Silva, BV , Borges, TC , Marques, BC , Dos Santos, MB , ve diğerleri . (2019) Candida spp.'ye karşı antifungal özelliklere sahip yeni bir akridon . ve dermatofitler ve C. albicans'a karşı antibiyofilm aktivitesi . J Appl Microbiol 127 : 1362–1372. [ PubMed ] [ Google Akademik ]
              • Orsi, CF, Borghi, E., Colombari, B., Neglia, RG, Quaglino, D., Ardizzoni, A., ve diğerleri . (2014) Candida albicans hiphal duvar proteini 1 (HWP1) genotipinin biyofilm üretimi ve mikroglial hücrelere mantar duyarlılığı üzerindeki etkisi . Mikrob Patog 69–70 : 20–27. [ PubMed ] [ Google Akademik ]
              • Pandin, C. , Le Coq, D. , Canette, A. , Aymerich, S. ve Briandet, R. (2017) Biyofilm yaşam tarzı mikrobiyal biyokontrol ajanları için dikkate alınmalı mı? Mikrob Biyoteknoloji 10 : 719-734. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Phan, QT , Myers, CL , Fu, Y. , Sheppard, DC , Yeaman, MR , Welch, WH , ve diğerleri . (2007) Als3, kaderinlere bağlanan ve konak hücreler tarafından endositozu indükleyen bir Candida albicans invazinidir . PLoS Biol 5 : 543–557. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Polke, M. , Leonhardt, I. , Kurzai, O. ve Jacobsen, ID (2018) Candida albicans'ta Farnesol sinyali - sadece iletişimden daha fazlası . Crit Rev Microbiol 44 : 230–243. [ PubMed ] [ Google Akademik ]
              • Prasath, KG , Sethupathy, S. ve Pandian, SK (2019) Proteomik analiz, Candida albicans'ta biyofilm ve virülansı engelleyen miristik asit tarafından ergosterol, sfingolipid ve oksidatif stres yolunun modülasyonunu ortaya çıkarır . J Proteomics 208 : 103503. [ PubMed ] [ Google Akademik ]
              • Pukkila-Worley, R. , Peleg, AY , Tampakakis, E. ve Mylonakis, E. (2009) Candida albicans hiphal oluşumu ve virülansı Caenorhabditis elegans enfeksiyon modeli kullanılarak değerlendirildi . Ökaryot Hücre 8 : 1750-1758. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Ramage, G., Saville, SP, Thomas, DP ve Lopez-Ribot, JL (2005) Candida biyofilmleri: bir güncelleme . Ökaryot Hücre 4 : 633-638. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Ramage, G. , Saville, SP , Wickes, BL ve Lopez-Ribot, JL (2002) Bir çekirdek algılayıcı molekül olan farnesol tarafından Candida albicans biyofilm oluşumunun inhibisyonu . Appl Environ Microbiol 68 : 5459–5463. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Ramanathan, S. , Ravindran, D. , Arunachalam, K. ve Arumugam, VR (2018) Çevresel patojen Serratia marcescens'te çekirdek algılamaya bağlı biyofilm ve virülans genlerinin ekspresyonunun petroselinik asit ile inhibisyonu . Antonie Van Leeuwenhoek 111 : 501–515. [ PubMed ] [ Google Akademik ]
              • Rasmussen, TB, Manefield, M., Andersen, JB, Eberl, L., Anthoni, U., Christophersen, C., ve diğerleri . (2000) Delisea pulchra furanonları, Serratia liquefaciens MG1'de çekirdek algılamayı ve sürü hareketliliğini nasıl etkiler . Mikrobiyoloji 146 : 3237-3244. [ PubMed ] [ Google Akademik ]
              • Santhakumari, S. , Nilofernisha, NM , Ponraj, JG , Pandian, SK ve Ravi, AV (2017) Artemia franciscana'nın virülent vibriolara karşı hayatta kalması üzerine bir antibiyofilm ajanı olarak Synechococcus elongatus'tan palmitik asidin in vitro ve in vivo araştırılması . J Invertebr Pathol 150 : 21–31. [ PubMed ] [ Google Akademik ]
              • Sardi, JC , Scorzoni, L. , Bernardi, T. , Fusco‐Almeida, AM ve Mendes Giannini, MJ (2013) Candida türleri: mevcut epidemiyoloji, patojenite, biyofilm oluşumu, doğal antifungal ürünler ve yeni terapötik seçenekler . J Med Microbiol 62 : 10–24. [ PubMed ] [ Google Akademik ]
              • Shareck, J. , Nantel, A. ve Belhumeur, P. (2011) Konjuge linoleik asit, Ras1p hücresel seviyelerini modüle ederek ve TEC1 ekspresyonunu aşağı regüle ederek Candida albicans'ta hif büyümesini inhibe eder . Ökaryot Hücre 10 : 565-577. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Shchepin, R. , Hornby, JM , Burger, E. , Niessen, T. , Dussault, P. ve Nickerson, KW (2003) Candida albicans'ta Quorum algılama : 40 doğal ve sentetik farnesol analoğu ile farnesolün etki modunun araştırılması . Chem Biol 10 : 743-750. [ PubMed ] [ Google Akademik ]
              • Shi, D. , Zhao, Y. , Yan, H. , Fu, H. , Shen, Y. , Lu, G. , ve diğerleri . (2016) Undesilenik asidin Candida albicans'ın biyofilm oluşumu üzerindeki antifungal etkileri . Int J Clin Pharmacol Ther 54 : 343–353. [ PubMed ] [ Google Akademik ]
              • Shirtliff, ME , Krom, BP , Meijering, RAM , Peters, BM , Zhu, J. , Scheper, MA , ve diğerleri . (2009) Candida albicans'ta Farnesol kaynaklı apoptoz . Antimicrob Agents Chemother 53 : 2392–2401. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • da Silva Cde, B. , Guterres, SS , Weisheimer, V. ve Schapoval, EE (2008) Limon otu yağı ve sitralin Candida spp . Braz J Infect Dis 12 : 63–66. [ PubMed ] [ Google Akademik ]
              • Singh, BN , Upreti, DK , Singh, BR , Pandey, G. , Verma, S. , Roy, S. , ve diğerleri . (2015) Quercetin , çekirdek algılamayı modüle ederek apoptotik hücre ölümünü indüklemek için flukonazole dirençli Candida albicans'ı duyarlı hale getirir . Antimikrobiyal Ajanlar Chemother 59 : 2153–2168. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Song, SH , Sun, XY , Meng, LL , Wu, QH , Wang, K. ve Deng, YY (2020) Hipokrellin bileşiklerinin antifungal aktivitesi ve Candida albicans'a karşı antimikrobiyal ajanlarla sinerjik etkileri . Mikrob Biyoteknoloji , 1–14. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Tampakakis, E. , Okoli, I. ve Mylonakis, E. (2008) AC elegans bazlı , bütün hayvan, antifungal bileşiklerin tanımlanması için in vivo tarama . Nat Protokol 3 : 1925–1931. [ PubMed ] [ Google Akademik ]
              • Teplitski, M., Robinson, JB ve Bauer, WD (2000) Bitkiler, bakteriyel N -asil homoserin lakton sinyal aktivitelerini taklit eden ve ilişkili bakterilerde popülasyon yoğunluğuna bağlı davranışları etkileyen maddeler salgılar . Mol Bitki Mikrobu In 13 : 637-648. [ PubMed ] [ Google Akademik ]
              • Thibane, VS , Kock, JLF , Ells, R. , van Wyk, PWJ ve Pohl, CH (2010) Deniz çoklu doymamış yağ asitlerinin Candida albicans ve Candida dubliniensis'in biyofilm oluşumu üzerindeki etkisi . Mar Uyuşturucu 8 : 2597–2604. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Traul, KA, Driedger, A., Ingle, DL ve Nakhasi, D. (2000) Orta zincirli trigliseritlerin toksikolojik özelliklerinin gözden geçirilmesi . Gıda Kimyasal Toksikol 38 : 79-98. [ PubMed ] [ Google Akademik ]
              • Vílchez, R. , Lemme, A. , Ballhausen, B. , Thiel, V. , Schulz, S. , Jansen, R. , ve diğerleri . (2010) Streptococcus mutans , yağ asidi sinyal molekülü trans -2-dekenoik asit (SDSF) tarafından Candida albicans hiphal oluşumunu inhibe eder . ChemBioChem 11 : 1552–1562. [ PubMed ] [ Google Akademik ]
              • Weber, K. , Sohr, R. , Schulz, B. , Fleischhacker, M. ve Ruhnke, M. (2008) Sekiz farklı Candid a türünde E , E -farnesol ve biyofilm oluşumu salgılanması . Antimikrobiyal Ajanlar Chemother 52 : 1859–1861. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Weete, JD , Abril, M. ve Blackwell, M. (2010) Mantar sterollerinin filogenetik dağılımı . PLoS One 5 : e10899. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Wenderska, IB, Chong, M., McNulty, J., Wright, GD ve Burrows, LL (2011) Palmitoyl ‐ DL -carnitine, Pseudomonas aeruginosa biyofilm gelişiminin çok hedefli bir inhibitörüdür . ChemBioChem 12 : 2759–2766. [ PubMed ] [ Google Akademik ]
              • Whaley, SG , Berkow, EL , Rybak, JM , Nishimoto, AT , Barker, KS ve Rogers, PD (2016) Candida albicans ve ortaya çıkan albicans olmayan Candida türlerinde Azole antifungal direnci . Front Microbiol 7 : 2173. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Wright, GD (2015) Antibiyotik krizini çözme . ACS Infect Dis 1 : 80–84. [ PubMed ] [ Google Akademik ]
              • Yoon, BK , Jackman, JA , Valle‐Gonzalez, ER ve Cho, NJ (2018) Antibakteriyel serbest yağ asitleri ve monogliseritler: Biyolojik aktiviteler, deneysel testler ve terapötik uygulamalar . Int J Mol Sci 19 : 1114. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
              • Zhang, LH ve Dong, YH (2004) Nisap algılama ve sinyal girişimi: çeşitli çıkarımlar . Mol Microbiol 53 : 1563–1571. [ PubMed ] [ Google Akademik ]

              Yorum yap


              • #8
                Glioblastoma için Potansiyel Yağ Asidi Kemoterapötik Olarak Kaprilik (Oktanoik) Asit

                Meriç A Altınöz1, Aysel Özpınar2, Thomas N Seyfried3
                Bağlantılar genişletmek
                • PMID: 32512365
                • DOI: 10.1016/j.plefa.2020.102142
                Soyut


                Anaplastik astrositom (WHO Derece-III) ve glioblastoma multiforme (GBM, WHO Derece-IV) dahil olmak üzere yüksek dereceli glial tümörler (HGG'ler), insanoğlunun bildiği en kötü huylu kanserler arasındadır. HGG hücreleri, kusurlu mitokondrileri nedeniyle oksijen varlığında bile glikoliz yoluyla glikoz tüketir. Hiperglisemik HGG hastalarında genel sağkalım daha kötüdür. Normal sinir hücrelerinin aksine, HGG hücreleri enerji için keton cisimlerini verimli bir şekilde metabolize edemez. Bu nedenle, GBM'yi tedavi etmek için terapötik ketozise (yüksek keton cisimleri ile düşük glikoz) dayalı bir metabolik tedavi önerildi ve klinik öncesi çalışmalardan desteklendi. Monokarboksilatlı doymuş bir yağ asidi olan kaprilik (oktanoik) asit, keton cisimlerinin en iyi üreticileri arasındadır ve yüksek dozda deneysel tümörlerin nekrozunu indükler. Kaprilik asit hindistancevizi ve keçide zenginleştirilmiştir. süt. Aynı zamanda grelin hormonunun translasyon sonrası değiştiricisidir ve insan dokularında eser miktarlarda üretilir. Kaprilik asit, HGG ile ilişkili nöbetlerin tedavisinde kullanılan ve epidemiyolojik gözlemlere göre GBM hastalarında sağkalımı artırabilen antiepileptik valproik asidin düz zincirli bir izomeridir. Test edilen valproik asit analogları arasında kaprilik asit, in vitro olarak C6 astrositoma hücre büyümesini bloke eden en güçlü moleküldür ve in vivo Pozitron Emisyon Tomografisi ile gösterildiği gibi glial hücreler içinde seçici olarak birikir. Kaprilik asit, hem sağlıklı karaciğerde hem de kötü huylu karaciğer hücrelerinde glikolizi bloke eder, bu ikincisinde daha belirgindir ve ayrıca kan şekerini düşürür. Kayda değer, kaprilik asit, çeşitli nörodejeneratif hastalık modellerinde nöroprotektif ve mitokondri koruyucu etkiler uygular.

                Anahtar Kelimeler: Kaprilat; kaprilik; Glial tümör; glioblastom; oktanoat; Oktanoik.

                Telif hakkı © 2020 Elsevier Ltd. Tüm hakları saklıdır. Çıkar çatışması beyanı


                Rakip Çıkar Beyanı Bildirilecek Yok. benzer makaleler
                • Oktanoillenmiş ghrelin fonksiyonlarını modüle etmek için diyet kaprilik asit ve grelin O-asiltransferaz aktivitesi: Bu beslenme alanında yeni olan nedir?
                  Lemarié F, Beauchamp E, Drouin G, Legrand P, Rioux V.Prostaglandinler Leukot Essent Yağ Asitleri. 2018 Ağustos;135:121-127. doi: 10.1016/j.plefa.2018.07.009. Epub 2018 27 Temmuz.PMID: 30103923 Gözden geçirmek.
                • Keton cisimlerinin yetişkin ve pediatrik glioblastom tedavisi için glikolitik inhibisyona katkısı.
                  Vallejo FA, Shah SS, de Cordoba N, Walters WM, Prince J, Khatib Z, Komotar RJ, Vanni S, Graham RM.J Neurooncol. 2020 Nisan;147(2):317-326. doi: 10.1007/s11060-020-03431-w. Epub 2020 24 Şubat.PMID: 32096068
                • Ghrelin oktanilasyonuna özel odaklanarak kaprilik asidin (C8:0) metabolizmasını ve fizyolojik işlevlerini yeniden gözden geçirmek.
                  Lemarié F, Beauchamp E, Legrand P, Rioux V.Biyokimya. 2016 Ocak;120:40-8. doi: 10.1016/j.biochi.2015.08.002. Epub 2015 4 Ağu.PMID: 26253695 Gözden geçirmek.
                • Kombine asetil-11-keto-β-boswellik asit ve radyasyon tedavisi, glioblastoma tümör hücrelerini inhibe etti.
                  Conti S, Vexler A, Edry-Botzer L, Kalich-Philosoph L, Corn BW, Shtraus N, Meir Y, Hagoel L, Shtabsky A, Marmor S, Earon G, Lev-Ari S.PLoS Bir. 2018 Temmuz 3;13(7):e0198627. doi: 10.1371/journal.pone.0198627. eKoleksiyon 2018.PMID: 29969452 Ücretsiz PMC makalesi.
                • Ağır Kanserler İçin Metabolik İnhibitör Kokteyl: Pankreas Kanseri ve Glioblastoma Multiforme Tedavisinde Metformin, Pioglitazon ve Lityum Kombinasyonu.
                  Elmacı İ, Altınöz MA.Biyokimya Genet. 2016 Ekim;54(5):573-618. doi: 10.1007/s10528-016-9754-9. Epub 2016 Temmuz 4.PMID: 27377891 Gözden geçirmek.

                Yorum yap


                • #9
                  Kaprilik asit, Aspergillus niger S17-5'te hidroksiheksilitakonik asit üretimini arttırır

                  Y Aso1, Y Nomura1, M Sano1, $ Sato1, T Tanaka1, H Ohara1, K Matsumoto2, K Wada2
                  Bağlantılar genişletmek
                  • PMID: 33064909
                  • DOI: 10.1111/jam.14900
                  Soyut

                  Amaç: Aspergillus niger S17-5 sitotoksik ve polimer yapı taşı özelliklerine sahip iki alkilitakonik asit, 9-hidroksiheksilitakonik asit (9-HHIA) ve 10-hidroksiheksilitakonik asit (10-HHIA) üretir. Bu çalışmada, A. niger S17-5 kültürüne beklenen öncülleri olan kaprilik asidin eklenmesiyle 9-HHIA ve 10-HHIA üretimini karakterize ettik ve 9-HHIA ve 10-HHIA'nın toplu fermentasyonunu gösterdik. DO-stat'lı bir kavanoz fermenter.

                  Yöntemler ve sonuçlar: 25 günlük kültivasyondan sonra bir şişede %3 glikozdan 9-HHIA ve 10-HHIA üretim titreleri sırasıyla 0-35 ve 1.01 gl -1 idi. A. niger S17-5'in dinlenme hücrelerinin bir süspansiyonuna 0.22 gl- 1 kaprilik asit ilavesi, ilave yapılmamasına kıyasla toplam 9-HHIA ve 10-HHIA üretiminde %32 artışa yol açtı. Oksaloasetik asit ilavesiyle 9-HHIA veya 10-HHIA üretiminde hiçbir artış gözlenmedi. Büyümenin ortasında kültüre kaprilik asit ilavesi, kaprilik asit tarafından daha az hücre büyümesi inhibisyonu nedeniyle 9-HHIA ve 10-HHIA üretimi için daha uygundur. %3 glikoz ve 14.4 gl -1 ile DO-stat toplu fermantasyonu1,5 l'lik bir kavanoz fermenterindeki kaprilik asidin 10 günlük kültivasyondan sonra 9-HHIA ve 10-HHIA üretim titrelerinin sırasıyla 0.48 ve 1.54 gl -1 olmasıyla sonuçlandı.

                  Sonuçlar: A. niger S17-5 kültürüne kaprilik asit eklenmesi, 9-HHIA ve 10-HHIA üretimini arttırır.

                  Çalışmanın önemi ve etkisi: Bu sonuçlar, 9-HHIA ve 10-HHIA'nın kaprilik asitten türetilen oktanoil-CoA ile sentezlendiğini ve 9-HHIA ve 10-HHIA'da oktanoil-CoA tedarikinin hız sınırlayıcı bir adım olduğunu göstermektedir. HHIA üretimi. Bildiğimiz kadarıyla, bu, bir kavanoz fermenterinde doğal olarak oluşan itakonik asit türevlerinin fermantasyonu ile ilgili ilk rapordur.

                  Anahtar Kelimeler: Aspergillus niger; alkilitakonik asit; Kaprilik asit; fermantasyon;

                  Yorum yap


                  • #10
                    Caprylic Acid ile Candida Tedavisi, Hindistan Cevizi Faydaları.


                    TAYLAN'da Tatili yapmış HPV, HSV, HİV Virüsü ve CANDİDA Mantarı kapmış, Hanımına bulaştırmış söyleme

                    Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 15 September 2022, 13:05 ) değiştirilmiştir.

                    Yorum yap

                    Hazırlanıyor...
                    X