

GURMAR İle Diyabet ve Tansiyon
-
-
Yüksek şeker, Şeker İlacı Nasıl bırakılır Şeker Hastalığını Bitiren Bitki Nedir Faydaları Nedir
Yorum yap
-
Tansiyona Ne İyi Gelir Şekere Ne İyi Gelir Diyabete Ne İyi Gelir Gurmar'ın Faydaları Nedir
Yorum yap
-
Gastrit NedirŞeker Hastalığı Tedavisi Mümkün Mü Gurmar.
Yorum yap
-
İnsülin İğnesinden Kurtulmak İçin Ne Yapmalıyız Diyabete Faydalı Bitkiler Nelerdir.
Yorum yap
-
Gurmar Nerede Yetişir Gurmar Bitkisi Hangi Rahatsızlığımıza İyi Gelir Gurmar İçeriği Nedir.
Yorum yap
-
Gizli Şeker Nedir Gizli Şeker Nasıl Anlaşılır Gizli Şeker Rahatsızlığından Nasıl kurtuluruz.
Yorum yap
-
Diyabet(Şeker) ve Tansiyon Nasıl Düşürülür Diyabet ve Tansiyon Nasıl Tedavi Edilir.
Yorum yap
-
Diyabet(Şeker) Hastalığından Nasıl Kurtuluruz İnsülin Kullanmadan İyileşmek Mümkün Mü
Yorum yap
-
Gurmar Toz Ekstraktı, Bitki Ekstraktı, , Bitkisel Ekstrakt, Bitki Tozu, Bitki Ekstresi
Yorum yap
-
Şeker Hastalığı Nasıl Tedavi Edilir İnsülin Direnci Nasıl Düşer Şeker Hastaları Ne KullanmalıYorum yap
-
Galega officinalis özü, diyabetin proliferasyon, lökosit fonksiyonları ve apoptozu ile ilgili diyabetini düzenler
Mariia Nagalievska, Mariya Sabadashka, [...] ve Nataliia Sybirna
Bozulmuş lökosit fonksiyonu, diabetes mellituslu hastaların enfeksiyonlara duyarlılığına neden olan faktördür. Diyabet patogenezinde yer alan immünolojik süreçlerin anlaşılması için en büyük önem, hastalık sırasında immünolojik profilin ve buradaki değişikliklerin karakteristiklerini vermektir. Diyabet tedavisinde halk hekimliğinde uzun süredir kullanılan Galega officinalis L., bağışıklık sistemi işlev bozukluğunun düzeltilmesi için seçilmiştir.
Yöntemler
Deneyler erkek Wistar sıçanları üzerinde gerçekleştirildi. Kemik iliği hücreleri süspansiyonunun fraksiyonlanması, üç katmanlı bir ficoll-sodyum amidotrizoat yoğunluk gradyanında gerçekleştirildi. Lenfositik-granülositik hücrelerin proliferatif aktivitesi, 5-bromo-2p-deoksiüridin (BrdU) ile enzim immünodeneyi kullanılarak araştırıldı. Kemik iliği preparatlarının boyanması için May-Gruenwald-Romanowsky-Giemsa (Pappenheim) yöntemi kullanılmıştır. Nötrofilik lökositlerde katyonik proteinlerin ve miyeloperoksidaz içeriğinin değerlendirilmesi için sitokimyasal çalışmalar yapılmıştır. Tümör nekroz faktörü alfa içeriği, immüno-enzimatik analizle gerçekleştirildi. Lenfosit apoptozu, anneksin V kullanılarak floresan analizi ile incelendi. Sonuçlar
Diyabetes mellitus gelişimine nötrofil ve lenfosit proliferasyonunun ihlali, miyeloperoksidaz aktivitesinin artması ve apoptoz sürecinin artması eşlik etti. Uygulanması keçisedefi diyabet koşulda ekstresi nötrofiller kemik iliği havuzunun restorasyon ve lenfoblastlardır sayısının azaltılması teşvik ve lenfositlerin apoptosis sürecin inhibe edilmesini sağlar.
Sonuçlar
Araştırılan tıbbın, diyabetes mellitus koşulları altında belirgin bir immüno-düzeltici etkisi vardır ve yeni nesil antidiyabetik ilaçların temelini oluşturabilir.
Anahtar Kelimeler: keçisedefi L., diabetes mellitus, bağışıklık sistemi hücreleri
Son on yıl, bağışıklık sisteminin insüline bağımlı diabetes mellitus (DM) patogenezinde önemli bir rol oynadığını gösteren kanıtları biriktirmiştir [ 1 ]. DM'li bazı hastalar enfeksiyon insidansında artış göstermiştir. Bu enfeksiyonların bazılarının diyabetik olmayan hastalarda diyabetik hastalara göre daha karmaşık bir seyir izlemesi daha olasıdır [ 2 ]. Diyabetle ilgili komplikasyonlar, spesifik olmayandan spesifik bağışıklık sistemlerine kadar konakçı savunma mekanizmalarının bozulmasına yansır. Kötü kontrollü hastalığı olan şeker hastalarının lenfositlerinde farklı uyaranlara proliferatif yanıtın inhibisyonu gözlenmiştir [ 3 ].
Bir bağışıklık tepkisinin kalitesi ve büyüklüğü, bağışıklık sistemi hücreleri arasındaki iletişim ile belirlenir [ 4 ].
Diyabet gibi enflamatuar bir bozukluğa eşlik eden doğuştan lenfosit fonksiyonları eşlik eder, bu da doku enfeksiyonu, bariyer ihlali ve lokal enfeksiyon sırasında ciddi patolojiye yol açar. Uyarlanabilir bağışıklık tepkileri, çözünür meditatörlerin ve hücre temasına bağlı etkileşimlerin serbest bırakılmasıyla veya antijen sunan hücreler ve stromal hücreler üzerinde etkili olarak bu hücreler tarafından modüle edilebilir. Doğal lenfositler T yardımcı hücre sitokinleri tarafından üretilen makrofajların, eozinofillerin, nötrofillerin ve dendritik hücrelerin sayısını ve aktivitesini modüle eder ve doğrudan T hücrelerini etkiler. İnflamatuar bozukluklar sırasında patojenlerin tekrar tekrar maruz kalmasına dokuya özgü immün yanıtlar T hücreleri ve doğuştan gelen lenfosit etkileşimleri ile koordine edilebilir [ 5 ].
Bozulmuş lökosit fonksiyonları, DM'li hastalarda enfeksiyonlara yatkınlığa neden olan faktörlerdir. Bu nedenle, immünolojik profilin özellikleri ve hastalık seyrindeki değişiklikler DM patogenezinde yer alan immünolojik süreçleri anlamak için çok önemlidir. Ek olarak, tercihen olumsuz etkiler olmaksızın, bağışıklık tepkisinin sessizliğini ve / veya modülasyonunu sağlayan etkili ilaçların araştırılması en umut verici çalışma alanıdır.
Bu nedenle, bağışıklık sistemi işlev bozukluğunun düzeltilmesi için uzun zamandır halk hekimliğinde diyabet tedavisinde kullanılan Galega officinalis L. seçilmiştir. Ön araştırma, Galega officinalis özütünün günde 600 mg / kg dozda uygulanmasının, DM koşulu altında belirgin hipoglisemik etkiyi ortaya çıkardığını tespit etti. Antioksidan ve antiradik koruma mekanizmalarının mobilizasyonunu göstermiştir. Aynı zamanda bu ekstraktın lökosit diferansiyel sayısı üzerinde düzeltici etkisi olmuştur. Galega officinalisekstrakt, apoptoz düzenleyici proteinler (p53 ve Bcl-2) ve sıçanlarda lökositlerde poli- (ADP) -Rosilatlanmış proteinler içeren beyaz kan hücrelerinin normalleşmesiyle kanıtlanan genetik olarak programlanmış hücre ölümü üzerindeki önleyici etkiyi ortaya koydu [ 6 - 8 ]. Galega officinalis'ten izole edilen immünomodülatör aktiviteye sahip olan biyolojik olarak aktif maddeler hakkında bilgi eksikliği , analiz edilen literatür verilerinde not edilmiştir.
Bu nedenle, bu çalışmanın amacı, Galega officinalisekstraktının kloroform fraksiyonunda biyolojik olarak aktif maddelerin kalitatif ve kantitatif analizini sağlamak ve ekstraktın lökosit farklılaşması (timidin analogu 5-bromo-2eo-deoksiüridin dahil edilmesi üzerindeki etkisi) streptozotosin intraabdominal enjeksiyonu ile indüklenen deneysel diyabet mellitus tip 1 altında çoğalan kemik iliği hücreleri, lökosit öncüleri popülasyonu), nötrofiller fonksiyonel aktivite (miyeloperoksidaz ve katyonik protein içeriği) ve lenfosit apoptozu.
Yöntemler
Bitki materyali
Galega officinalis'in hava (yaprakları ve sapları) kısımları Haziran 2013'te Lviv, Ukrayna'dan toplandı. Taksonomik tanımlama, Ivan Franko Lviv Ulusal Üniversitesi, Kıdemli Araştırma Görevlisi Mariia Skybitska'nın şifalı bitkiler koleksiyonunun küratörü tarafından yapıldı. Ivan Franko Lviv Ulusal Üniversitesi, Lviv, Ukrayna, Botanik Bölümü Herbaryumunda bir makbuz örneği bırakılmıştır.
Hazırlanması keçisedefi özü ve bileşikleri tanımlama [ 9 , 10 ]
Galega officinalisIvan Franko Lviv Ulusal Üniversitesi Botanik Bahçesi'nde tanıtılan çalışmalarda kullanıldı. Hava (yapraklar ve saplar) kısmı çiçeklenme sırasında toplandı, daha sonra kurutuldu, homojenleştirildi ve oda sıcaklığında 1: 5 oranında 12 saat boyunca% 96 etanolde infüzyonla etanol özü üretildi. Etanol özütü, sıkışma kıvamında yoğun tortu özü elde etmek için 50-55 ° C sıcaklıkta döner buharlaştırıcılar LABOROTA 4001 (Heidolph, Almanya) kullanılarak vakumda buharlaştırıldı. Ham ekstrakt verimi yüzdesi% 15-17'dir. Buharlaştırılmış orijinal etanol ekstraktına eşit hacimde su ve kloroform ilave edildi. Çalkalandıktan sonra örnekler 600 g'de 10 dakika santrifüjlendi. Elde edilen kloroform kısmı, katı bir tortu elde etmek için 50-55 ° C'lik bir sıcaklıkta vakumda buharlaştırıldı. Kloroform fraksiyonunun verim yüzdesi% 3.3-5 idi.Pseudomonas sp . Başlangıç karışımına 0.6 g / l) bir PS-17 biyosentezi, Galega officinalis özütünün kloroform fraksiyonuna su ilave edildikten sonra Vortex (Biosan, Letonya) içerisinde çalkalanarak elde edildi. Bu ekstraksiyon yöntemi, toksik alkaloidlerden yoksun olan stabil bir su emülsiyonu sağlar. Araştırma için kloroform fraksiyonunun stabilize edilmiş su emülsiyonu ile kontrol hayvanlarına ve DM'li hayvanlara günde 2 hafta boyunca aynı anda oral yoldan muamele edildi.
Ekstraktın kloroform fraksiyonu, kütle spektrometre dedektörü 5979В ile bir Agilent Technology 6890 N kromatografisi kullanılarak analiz edildi. Analiz koşulları: HP-5MS 30 m uzunluğunda ve 250 μm iç çapı, 0.25 μm faz kromatografik kılcal sütun. Helyum taşıyıcı gaz olarak 1.5 ml / dakikalık sabit akış hızında ve 1 ml numune hacminde kullanıldı. Enjektör 7683В, Bölünmüş 20: 1, evaporatör sıcaklığı 250 ° C. Termostat programlanan sıcaklık 75 ° C (2 dakikadan fazla) 15 ° C / dak ila 300 ° C (9 dakika içinde) ısıtılarak. Kütle seçici dedektör, 280 ° C arayüz sıcaklığı, elektron darbesi ile iyonizasyon, iyonlaşma enerjisi 70 eV, 230 ° C iyon kaynak sıcaklığı, dörtlü sıcaklık 150 ° C. Toplam gaz kromatografisi süresi 24 dakika idi. Her bir bileşenin miktarının nispi yüzdesi, ortalama tepe alanı ile toplam alan karşılaştırılarak hesaplanır. Tanımlama, kütle spektrumları ile kütle spektral kütüphaneleri NIST05a ve WILEY karşılaştırılarak gerçekleştirildi.
Deney hayvanları;
Deneyler, 150 ila 220 g ağırlığında üç aylık erkek Wistar sıçanları kullanılarak gerçekleştirildi. Hayvanlar, 25 ± 2 ° C ve% 45-55 bağıl nem kontrollü sıcaklıkta temiz ve kuru polipropilen kafeslerde ve hayvan evinde 12 saatlik karanlık ışık döngüsünde tutuldu (Lviv Ivan Franko Ulusal Üniversitesi). Sıçanlar standart bir laboratuvar diyeti ve su ad libitum ile beslendi. Sıçanlar, herhangi bir deneysel manipülasyondan önce çevrelerine uyum sağlamak için en az 7 gün iklimlendirildi. Deneyden 12 saat önce ve deney sırasında yiyecekler geri çekildi. Sıçanların genel sağlık durumları alternatif günlerde izlendi ve barınma süresi boyunca hiçbir olumsuz olay kaydedilmedi. Bu çalışmada kullanılan protokol “Hayvanlar üzerinde yapılan deneylerin genel etik ilkeleri” ne göre, I Ulusal Biyoetik Kongresi'nde (Kiev, 2001) ve Deneysel ve Diğer Bilimsel Amaçlarla Kullanılan Omurgalı Hayvanların Korunmasına İlişkin Avrupa Sözleşmesinde (Strasbourg, Fransa, 1986) kabul edilmiş ve Ivan Franko Ulusal Üniversitesi Etik Kurulu'ndan onay alınmıştır. Lviv, Ukrayna. Hayvanlar rastgele aşağıdaki gruplara ayrıldı (n = 5-8 / grup): kontrol hayvanları (C); günde 600 mg / kg (C + G) dozunda Galega officinalis özü ile tedavi edilen kontrol hayvanları ; diyabetes mellituslu hayvanlar (D); Galega officinalis özü ile günde 600 mg / kg dozunda (D + G) tedavi edilen diyabetli hayvanlar . Tedavilere tabi tutulan hayvanlardan alınan tüm numuneler veri analizine dahil edilmiştir. Grup C + G ve D + G'den gelen hayvanlar bir tüp yoluyla stabilize edilmiş su kloroform fraksiyonu Galega officinalisözü emiyordu , C ve D grubundaki hayvanlar aynı şekilde ve bir gün boyunca su alıyorlardı.
Diyabet indüksiyonu
Bir gece açlıktan sonra diyabet, vücut ağırlığındaki 0,055 g / kg'lık bir dozda 10 mM sitrat tamponunda (pH 5.5) kullanılmadan önce çözünmüş olan intraabdominal streptozotosin (Sigma, ABD) enjeksiyonuyla indüklenmiştir. Açlık kan şekeri seviyesi, DM gelişimini değerlendirmek için 3 gün sonra ölçülmüştür. Çalışılan ilaçlar diyabetin indüksiyonundan sonraki 14 gün içinde uygulanmaya başlandı.
Biyokimyasal analiz
Plazmada glikoz seviyesi, ticari olarak temin edilebilen bir kit (Filisit diagnostics, Ukrayna) kullanılarak glikoseoksidaz yöntemi ile belirlendi. 10 mmol / l ve daha yüksek glikoz konsantrasyonuna sahip hayvanlar, yapılan araştırmada kullanılmıştır. Plazmadaki glikoz seviyesi, diyabetik hayvan gruplarına ait sıçanların doğru test edilmesi amacıyla rutin bir prosedür olarak belirlenmiştir. Bu sonuçlar makalede gösterilmemiştir.
Kan ve kan lökositleri ayrılması
Deney süresinin sonunda, sıçanlar 15 saat boyunca aç bırakıldı, daha sonra derin dietil eter anestezi yöntemi kullanılarak anestezi uygulandı ve dekapitasyon ile ötenazi yapıldı. Tam kan alındı ve hemen heparinize tüplere aktarıldı. Lökositler, Histopak-1083 (1.083 g / ml yoğunluk) gradyanı üzerinde ayrıldı (Sigma, ABD).
May-Gruenwald-Romanowsky-Giemsa (Pappenheim) yöntemi kullanılarak kemik iliği preparatlarının boyanması [ 11 , 12 ]
Kuru kemik iliği bulaşmasına May-Gruenwald boya çözeltisi uygulandı. 3 dakika sonra eşdeğer miktarda distile su ilave edildi ve iyice karıştırıldı. Leke renkli pembe olduğunda, boya döküldü ve taze hazırlanmış Romanowsky-Giemsa boyası hala ıslak kemik iliği bulaşmasına ilave edildi. 8-15 dakika sonra boya döküldü ve yayma suyla yıkandı. Tüm kemik iliği hücreleri (en az 500) yaymanın çeşitli bölgelerinde sayıldı ve nötrofil ve lenfosit öncüllerinin yüzdesi hesaplandı. Toplam lenfosit öncüsü miktarı% 100 olarak kabul edildi. Kemik iliği lenfositik-granülositik hücre analizinin proliferatif aktivitesi
Lenfositik-granülositik hücrelerin proliferatif aktivitesi, enzim immüno-analizi kullanılarak araştırıldı. Bu tahlil, çoğalan hücrelerin nükleik asitlerine timidin analogu - 5-bromo-2p-deoksiüridin (BrdU) dahil edilme seviyesinin kantitatif bir değerlendirmesine izin verir. Hayvanlar, 50 g / kg vücut ağırlığı dozunda intraperitonal olarak BrdU (Millipore, ABD) ile enjekte edildi. BrdU enjeksiyonundan 12 saat sonra hayvanlar başları kesildi ve femurlar kemik iliği hücre süspansiyonunun daha fazla aspirasyonu için izole edildi. Kemik iliği hücrelerinin süspansiyonunun fraksiyonlanması, üç katmanlı bir ficoll-sodyum amidotrizoat yoğunluk gradyanında gerçekleştirilmiştir [ 12 ]. Yoğunluk gradyan aşağıdaki sırayla fikol-sodyum amidotrizoat çözeltilerinin tabakalar halinde yerleştirilmesi yoluyla hazırlanmıştır: ρ3 = 1,11 g / cm ' 3 , ρ2 = 1,09 g / cc3ve ρ1 = 1,03 g / cm ' 3 . Kemik iliği hücreleri süspansiyonu üst tabakaya uygulandı, daha sonra tüpler 10 dakika boyunca 500 g'de santrifüjlendi. Bu durumda, hücreler gradyan çözeltilerini farklı katmanlarda ayırma sınırlarında yoğunlaştı: lenfoid, eritroid ve granülosit-monosit popülasyonları. Lenfoid ve granülosit-monosit hücrelerinin popülasyonları birleştirildi ve daha sonra fizyolojik salin tamponu ile yıkandı ve daha sonraki araştırmalar için kullanıldı. Proliferatif aktivite, üretici seti “Brdu Hücresi Proliferasyon Deneyi” (Millipore, ABD) protokolüne göre belirlendi.
Nötrofillerdeki katyonik protein içeriğinin kandan belirlenmesi [ 13 ]
Enzim olmayan katyonik proteinler spesifik ve azurofilik granüllerde esas olarak nötrofilik lökositlerde lokalizedir. Katyonik protein kimyasal özellikleri pozitif yük, NH çok sayıda neden olduğu 2moleküllerinde-grubuna. Katyonik proteinleri belirlemek için anyonik boyalar (broffenol mavisi) kullanılmıştır. Katyonik proteinler sitoplazmada mavi topaklar şeklinde tespit edildi. Mavi topaklı hücre sayısı mikroskobik olarak sayıldı.
Graham-Knol yöntemi ile kandaki nötrofillerdeki miyeloperoksidaz düzeyinin belirlenmesi [ 14 ]
Miyeloperoksidaz, hidrojen peroksit varlığında çeşitli substratların oksidasyonunu katalize eden bir lizozomal enzimdir. Çoğunlukla granülosit sitoplazmasındaki spesifik azurofilik granüllerde lokalizedir ve miyeloid hücrelerin ortak bir belirtecidir. Miyeloperoksidaz varlığında benzidin, kahverengi oksibenzidin oluşumu ile hidrojen peroksit tarafından oksitlenir. Miyeloperoksidaz sitoplazmada kahverengi bir pelet olarak tespit edildi. Kahverengi peletli hücrelerin sayısı mikroskopik olarak sayıldı.
Sitokimyasal çalışmaların değerlendirilmesi [ 15 ]
2.11 ve 2.12 sitokimyasal çalışmaların değerlendirilmesi, belirli bir renk değişen yoğunluğun (0, +, ++, +++) farklılaşmasına dayanan Astraldi prensibi kullanılarak yarı kantitatif yöntemle yapıldı. Sonuçlar, aşağıdaki formül kullanılarak hesaplanan ortalama sitokimyasal katsayı (ACC) olarak ifade edildi:
burada A - negatif (0) reaksiyona sahip bir dizi hücre, B - zayıf pozitif (+) reaksiyona sahip bir dizi hücre, C - orta derecede pozitif (++) reaksiyona sahip bir dizi hücre, D - keskin pozitif (+++) reaksiyon, n - sayılan bir dizi hücre. En az 200 hücre sayıldı.
Plazmadaki tümör nekroz faktörü alfa içeriğinin immüno-enzimatik analizi
Sıçanlar plazmasındaki TNF-a içeriği, üretici setinin protokolüne göre standart ELISA seti (Sigma, ABD) kullanılarak immüno-enzimatik analizle belirlendi.
Annexin V ile bağlanarak lenfosit apoptozunun floresan analizi
Hücre plazma membran seviyesinde apoptozun karakteristik biyokimyasal özelliği, fosfatidilserin (PS) kalıntılarının membranın iç kısmından dış tarafına translokasyonudur [ 16]. Hücre yüzeyindeki PS maruziyetini tanımlamak için florokrom - floresein izotiyosiyanat (annexin V-FITC, FITC eksitasyon dalga boyu - 494 nm ve emisyon 518 nm) ile konjuge edilen fosfolipid bağlayıcı protein annexin V kullanıldı. Membranın bütünlüğü ihlal edilirken, iç lipid tek tabakalı PS'ye anneksin bağlanırken, hücre zarlarının geçirgenliği için supravital boya propidyum iyodür (PI) kullanılmıştır. PI, hücreye nüfuz ettiğinde DNA molekülüne bağlanır ve görünür spektrumun kırmızı bölgesinde (uyarma dalga boyu 536 nm ve emisyon 617 nm) floresan bir bileşik oluşturur. Böylece, anneksin V-FITC ve PI ile hücrelerin çift floresan boyaması, apoptozun erken ve geç aşamalarında canlı hücre ve hücre sayısını tahmin etmeyi mümkün kılar. Bu çalışmada bir takım reaktifler Annexin V-FITC Apoptoz Tespit Kiti, «BioVision» (ABD) kullanılmıştır. PBS ile yıkadıktan sonra 2 × 10⁵ lökosit tamponu (10 mM HEPES / NaOH, pH 7.4, 140 mM NaCI ve 2.5 mM CaC 0.1 ml ilave edildi 2) 5 ul Annexin V-FITC (2.5 μg / ml çalışma konsantrasyonu) ve 5 μl PI (0.5 μg / ml çalışma konsantrasyonu) eklendi. Hücreler, oda sıcaklığında karanlıkta 15 dakika süreyle inkübe edildi, daha sonra süspansiyona 0.4 ml tampon ilave edildi. Lenfositin sitometrik analizi, akış sitometre FACSCalibur (Becton Dickinson, ABD) üzerinde yapıldı. Lökosit süspansiyon örneğinde aşağıdaki parametreler değerlendirildi: ileri saçılan ışık (FSC) (hücrelerin boyutunu karakterize eden), yan dağınık ışık (SSC) (sitoplazmanın optik heterojenliğini, hücresel kapanımların doğasını ve hücrelerin tanecikliğini karakterize eden) ve Annexin V-FITS (FL1) ve PI (FL3) floresansı. Lenfosit popülasyonu, SSC kapısına karşı FSC ile seçildi. Kalıntı (FSC ve SSC parametrelerinde) hariç tutulduktan ve lenfositik kapı tahsis edildikten sonra,DotPlot modundaki + - ve PI + -selleri belirlenmiştir. Hücre ölümü tipinin diskriminant analizi şunları içerir: 1. kadran bölgesi - anneksin V - / PI + - nekroz özellikli hücreler; 2. çeyrek bölge - geç apoptoz özellikleri olan anneksin V + / PI + hücreleri; 3. çeyrek bölge - anneksin V - / PI - - canlı hücreler; 4. çeyrek bölgesi - anneksin V + / PI - - erken apoptoz (. Şekil özellikleri olan hücreler 4 ). Tüm istatistiksel hesaplamalar ve hesaplamalar Cytomation Summit (MoFlo, ABD) ile yapıldı.
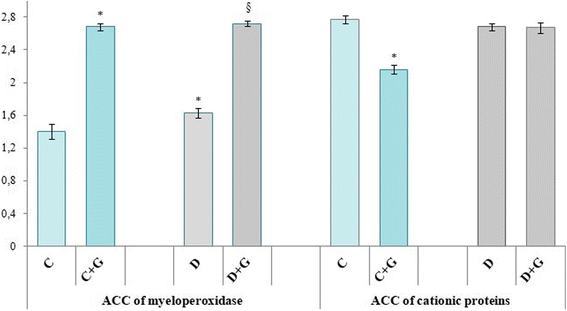
Şekil 4
Normal koşullarda ve deneysel diyabetes mellitus durumunda Galega officinalisekstraktı uygulaması altında miyeloperoksidaz ve katyonik proteinlerin ortalama sitokimyasal katsayısında (ACC) değişiklikler
Sonuçların istatistiksel analizi;
Sonuçların istatistiksel analizi Origin Pro kullanılarak yapıldı. Temel istatistiksel parametrelerin hesaplanması, çalışmadan elde edilen doğrudan kantitatif verilerle (aritmetik ortalama - M, aritmetik ortalama - m'nin standart sapması) gerçekleştirildi. İki alternatif veri setinin istatistiksel özellikleri arasındaki farkın güvenilirliğini değerlendirmek için tek yönlü varyans analizi yaptık. Fark, p ≥ 0.95 altında anlamlı kabul edildi (anlamlılık düzeyi P <0.05).
Sonuçlar;
Gaz kromatografisi / kütle spektrometrisi yönteminin Galega officinalis ekstraktındaki 31 bileşeni tanımlamasına izin verildi [ 17 ]. Bileşenlerin çoğu belirlenmiş ve Tablo l'de sunulmuştur 1 ve Şekil. 1 .
tablo 1
Galega officinalis özütünün kloroform fraksiyonundaki biyolojik olarak aktif maddelerin kalitatif ve kantitatif analizi
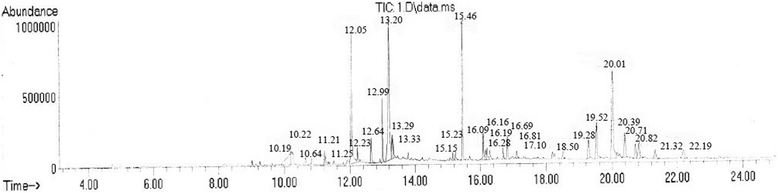
Şekil 1
Galega officinalis özütünün kloroform fraksiyonunda biyolojik olarak aktif maddelerin kromatogramı
Gaz kromatografisi / kütle spektrometresi yönteminin kullanımı ortaya keçisedefi özü kloroform parçası 31 bileşikleri, hangi yağlı asitler ve bunların esterleri (bütün bileşiklerin 39.10%), diterpen (6.16%), triterpenler (7.41%), fitosteroller (19.59% ) ve flavonoidler (% 2.89) tanımlandı.
Prolifere kemik iliği hücrelerinde timidin analogu 5-bromo-2p-deoksiüridin inklüzyon seviyesi enzim immünoanaliz yöntemi kullanılarak araştırıldı. Mitotik döngünün S-fazındaki lökositlerin proliferatif aktivitesinde 3.9 kat artış DM koşulları altında gerçekleşir (Şekil 2 ).
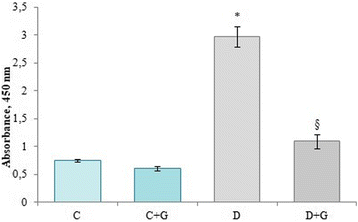
İncir. 2
Galega officinalis ekstraktının sağlıklı ve diyabetik sıçanların kemik iliği hücrelerinin proliferatif aktivitesi üzerine etkisi . * - P <0.05 kontrollerle karşılaştırıldığında. # - P <0.05 diyabetik ile karşılaştırıldığında ... Uygulanması gösterilmiştir keçisedefi (diyabet ile karşılaştırıldığında), çoğalan hücrelerden (Şek. DM ile hayvanlara ekstresi, 5-bromo-2'-deoksiüridin dahil seviyesinin 2.8 kat azalmaya neden (Şekil 2).2 ). Aynı zamanda, ekstrakt hayvan davranışında veya mortalitesinde önemli bir değişiklik üretmedi.
DM gelişimine kemik iliğindeki lökosit öncü popülasyonunda% 44 artış eşlik etti, ancak kemik iliğindeki lenfositlerin sayısı önemli değişikliklere uğramadı. Ayrıca, bir sonraki çocuk ve personel nötrofil sayısında% 31'lik bir azalmaya neden olan miyeloblast sayısında% 31'lik bir azalma gösterilmiştir (Tablo 2 ).
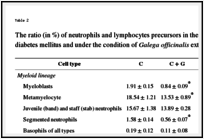
Tablo 2
Kontrol hayvanlarının, diabetes mellituslu hayvanların ve Galega officinalis özü uygulaması koşulu altında kemik iliğindeki nötrofil ve lenfosit öncüllerinin oranı (% olarak) DM Galega officinalis özü uygulaması olan hayvanlarda lenfoblastlarda% 18.6 oranında ve lenfositlerde% 31.1 oranında bir artışa neden olmuştur. Ayrıca, Galega officinalis özütü ile tedavi edilen kontrol hayvanlarında, kontrole kıyasla çocuk ve personel nötrofil sayısında (% 11.4 oranında) ve segmentli nötrofil sayısında (% 64.6) azalma kaydedildi . DM'li hayvanlara ekstre uygulama koşulları altında bir% 39.1 azalma sadece segmentli granülosit sayısı saptanmıştır, fakat bir eğilim juvenil arttırmak ve DM gösterildi karşı personel göre% 20,3 oranında içeriği granülositler (Tablo (Tablo 22 ) .Streptozotosin ile indüklenen DM'li hayvan grubunda, kontrol değerlerine kıyasla TNF-a içeriğinin% 44.9 oranında arttığı tespit edilmiştir. Ekstraktın DM'li hayvanlara uygulanması, bu sitokin konsantrasyonunda% 37.2 oranında azalmaya neden olmuştur (Şekil 3 ).
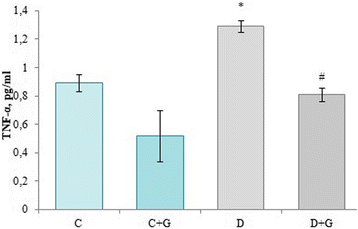
Şekil 3
Galega officinalis ekstraktının sağlıklı ve diyabetik sıçanların plazmasındaki TNF-α seviyesi üzerindeki etkisi
DM'nin gelişimine, kontrol hayvanlarına kıyasla ACC'nin% 16.4'lük bir büyüme oranının eşlik ettiği yüksek miktarda MPO içeren hücrelerin sayısındaki artış eşlik etti. Keçisedefi özü (Şek. DM hayvanlarda miyeloperoksidaz by12.9% arasında ACC azalmaya neden olduğu (Şekil 44 ).
DM gelişimine, katyonik proteinlerin ACC'sinde önemli bir değişiklik göstermeyen katyonik proteinlerin aracılık ettiği oksijene bağımlı olmayan mikrop öldürme mekanizmalarının ihlali eşlik etmez. Yönetimleri keçisedefi DM hayvanlara özü% 34.3 oranında, katyonik proteinlerin ACC azalmaya neden oldu. Sağlıklı hayvanlara uygulandı zaman özü, özellikle (Şek. Kontrol hayvanları ile karşılaştırıldığında, katyonik proteinlerin ACC 42.6% azalma ile gösterilmiştir benzer bir etki göstermiştir (Şekil 44).
FITC ve PI ile etiketlenmiş annexin V ile çift floresan boyama hücrelerinin kullanılması, apoptotik lenfositlerdeki değişikliklerin ciddiyetinin ayrıntılı bir değerlendirmesini ve canlı hücrelerdeki kan hücrelerinin kantitatif dağılımını elde etmeyi mümkün kılar, hücreler erken geç evrede apoptoz ve apoptozlu hücre aşamaları (Tablo 3 , Şekil 5 ).
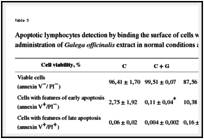
Tablo 3
Hücrelerin yüzeyinin annexin V ile bağlanması ve normal şartlarda ve deneysel diyabetes mellitus altında Galega officinalis özü uygulaması altında PI ile boyama ile apoptotik lenfositlerin saptanması
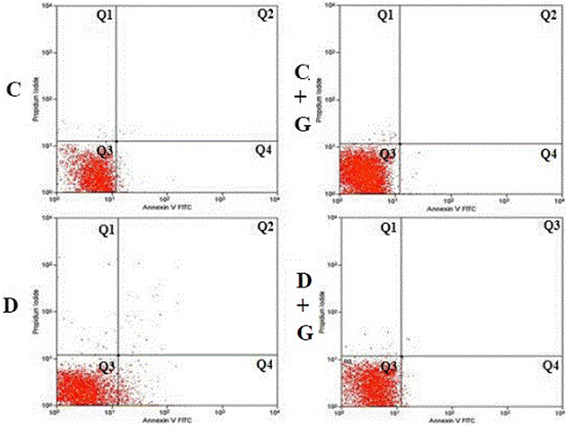
Şekil 5
DotPlot modunda apoptotik ve yaşayabilir lenfosit dağılımının iki boyutlu histogramı. Yatay eksende - anneksin V yoğunluğu - FITC floresan, dikey eksen - PI floresan yoğunluğu. Q3 (annexin V - / PI - ...
Canlılığa dayalı dağılım histogram analizi, kontrol çalışmasında hücre popülasyonunun canlı hücrelerin baskın çoğunluğu ve az sayıda apoptotik hücre (sırasıyla% 96.41 ve% 2.81) ile karakterize edildiğini göstermiştir. DM gelişimine neredeyse dört kez (kontrole kıyasla) artan sayıda anneksin pozitif hücre eşlik etti ve bu da PS'nin lenfosit yüzeyinde gelişmiş dışsallaşmasını gösterdi. Aynı zamanda da, propidyum iyodür pozitif reaksiyon vermiştir anneksin-pozitif hücre sayısı, 2.8 kat (Tablo artmıştır lekeleme (Tablo 3,3 , Şek. Şekil 55 ).
Galega officinalis özü uygulaması, sıçanların kontrol grubunda ve DM'li hayvanlarda (sırasıyla% 86.6 ve% 75 oranında) erken apoptoz ve geç apoptoz özelliklerine sahip lenfositlerin azalmasına (sırasıyla% 86 ve% 75 oranında) yol açar. incelenen patolojide ölüm yoğunluğu çok artmış olan genetik olarak programlanmış hücreler üzerindeki baskılayıcı etki.
Tartışma
Enflamatuar biyobelirteçler ile DM ve komplikasyonlarının ortaya çıkması arasında bir ilişki olduğunu gösteren bir takım kanıtlar vardır [ 18 , 19]. Enflamatuar sürece, beyaz kan hücrelerinin anahtar rol oynadığı artan sayıda efektör hücresi eşlik eder. Gerçekten de DM koşulları altında lökositlerin proliferatif aktivitesinde bir artış olduğu kanıtlanmıştır. Bizim düşüncemize göre, diyabet koşulları altında hangi kemik iliği hücre popülasyonlarının çoğaldığını incelemek ilginçti. Bu amaçla, kemik iliğindeki nötrofil ve lenfosit öncüllerinin oranı (yüzde olarak) analiz edildi. DM'nin gelişimine, kemik iliğindeki lökosit öncül popülasyonundaki değişiklikler ve çocuk ve personel nötrofil sayısında bir sonraki azalmaya neden olan miyeloblast sayısının azalması eşlik etti. Bu, bu hücrelerin kanda erken salınması veya oluşumunun azalmasından kaynaklanabilir. Bu, aracıların oranının, öncü hücrelerin özelleşmiş olgun granülositlere farklılaşmasını uyaran değişikliklerle veya miyeloid hücre fenotipinin modülasyonu yoluyla (özellikle reseptörlerin bu aracılara maruziyetinin azalmasıyla) aracılık edilebilir. DM hastalarında kan sitokin düzeyleri ile ilgili çelişkili veriler mevcuttur. İnterlökin (IL) -1β, IL-2, IL-6, IL-12, tümör nekroz faktörü (TNF) -α, interferon (IFN) gibi proinflamatuar ve tip 1 T yardımcı (Th1) hücrelerinin sitokinlerinin plazma seviyeleri DM'li hastalarda -ulo ve granülosit-makrofaj koloni uyarıcı faktör (GM-CSF) yukarı regüle edilebilir. Bununla birlikte, diğer çalışmalar DM'nin başlangıcında bu sitokinlerin üretiminde hiçbir fark olmadığını, hatta azaltılmış üretimini bildirmemiştir. Bununla birlikte,20–22].
TNF-α gibi enflamatuar sitokinlerin, otoimmün tip 1 diyabet patogenezinde önemli bir rol oynadığı düşünülmektedir. TNF-α, vit hücrelerinin in vitro imha edilmesinde doğrudan rol oynar ve doğrudan antijen sunan hücreler ve otoreaktif T lenfositleri üzerinde etkili olan in vivo olarak derin inflamatuar etkilere sahiptir [ 23]. DM koşulu altında TNF-a içeriğinin arttırılması, özellikle adipositlerde insülin reseptörü ve insülin reseptörü substratı-1'in (IRS-1) tirozin fosforilasyonunu inhibe ederek insülin sinyal yoluna müdahale edebilir. TNF-a'nın lipoliz uyarıcı etkisi, serbest yağ asitlerinin serum seviyelerinin artmasına yol açar, insülin duyarlılığını azaltır, ayrıca TNF'nin karaciğerdeki insülin etkisi üzerinde doğrudan inhibitör etkisi vardır. Bu TNF-α etkileri kasta glikoz alımının azalmasına ve hepatik glikoz üretiminin artmasına neden olur. Son veriler, TNF-a'nın ayrıca insülin duyarlılığını / direncini modüle ettiği bilinen birkaç adiposit geninin ekspresyonunu düzenlediğini göstermektedir. TNF, effects hücre fonksiyonunu doğrudan etkilerle azaltabilir ve diyabet gelişimindeki rolüne katkıda bulunabilir [ 24 ].
Nötrofil öncülerinin azalma nedeniyle, TNF-α içeriği (Tablo büyümesi vuku olabilir (Tablo 2,2 , Şek. Şekil 3).3 ). TNF'nin in vitro granülosit-makrofaj öncülleri üzerinde ve in vivo kararlı ve ilkel hematopoietik öncü üzerinde inhibe edici etkileri vardır. Spesifik olarak, olgun granülositlerin üretiminde artış ve TNF eksikliği olan farelerin kemik iliğinde taahhütlü granülosit-makrofaj progenitör hücrelerin (CFU-GM) sayısında bir artış gözlendi; bu, TNF'nin miyelopoez üzerinde in vitro olası bir inhibitör rolü olduğunu düşündürmektedir [ 25 ].
Nötrofiller öncülünün sayı azaltımının arka planındaki DM koşulu altında, lenfosit öncüllerinin sayısında - lenfoblastların sayısında% 44 oranında bir artış tespit ettik. Aynı zamanda, kemik iliği lenfosit sayısı önemli değişiklikler (Tablo uğramayan (Tablo 2).2). Bu, DM durumu altında kan dolaşımında olgunlaşmamış lenfositlerin bir çıkışını gösterebilir. Lenfositler, tip 1 DM'yi harekete geçiren bağışıklık yanıtında önemli bir rol oynar. Son zamanlarda, tek nükleotid polimorfizmlerinin DM ve diğer otoimmün hastalıklar ile ilişkili olduğu ve tercihen hücre süper arttırıcılar içinde zenginleştirildiği gösterilmiştir. Şaşırtıcı bir şekilde, süper-kansere bağlı genler, sitokinler, sitokin reseptörleri ve lenfositlerin çoğalmasını düzenleyen faktörler için çarpıcı bir zenginleşme gösterir [ 26 ]. Ek olarak, DM koşullarında artan lenfosit proliferasyonuna, protein kinaz C ve Toll benzeri reseptör 4 gibi lenfosit proliferasyonunda yer alan sinyal yollarının bozulması neden olabilir [ 27 ].
Öte yandan TNF-a, sitokin kaskad ve lökosit alımına dahil olan proinflamatuar bir sitokindir ve IL-12 ve IFN-y üretimi, Th1 polarizasyonu ve T hücresi farklılaşması için gerekli bir proimmün sitokindir [ 28]. Bu nedenle, DM koşullar altında lenfosit ön sayısı büyümesinin TNF-α içeriğine (Tablo büyümesine olabilir (Tablo 2,2 , Şek. Şekil 3,3 ).
Galega officinalis özütünün biyolojik olarak aktif maddelerinin farklı beyaz kan hücresi miktarı ve apoptotik süreç üzerindeki etkisi göz önüne alındığında, immünokompetan hücrelerin proliferasyonu üzerindeki etkisini analiz etmeyi uygun buluyoruz.
Galega officinalis özütü uygulaması koşulu altında lökosit öncüllerinin içeriğindeki değişikliklere , bu özütün biyolojik olarak aktif maddelerinin TNF-a üretimi üzerindeki etkisi neden olabilir. Elde edilen sonuç, Fabaceae özütünün TNF-a'yı ve diğer enflamatuar sitokinleri azaltan aktif bileşikler içerdiği gösterilmiş olan diğer çalışmalarla uyumludur. Fabaceae'nin, eklemi kaplayan sinoviyal dokuda TNF-a ve IL-1B'yi aktive eden genetik transkripsiyon faktörünü güçlü bir şekilde inhibe ederek TNF-a seviyelerini düşürdüğü gösterilmiştir [ 29 ].
Galega officinalis ekstraktının lökositlerin proliferatif aktivitesi üzerindeki etkisi , bileşiminde inositol varlığından kaynaklanabilir [ 17 ]. Ekzojen kaynaktan elde edilen inositol, insan sindirim sistemi yoluyla emilir ve aktif taşıma mekanizmaları ile hücrelerde içselleştirilir. İçselleştirmeden sonra inositol, kan plazması yoluyla uzak hücrelere kolayca taşınabilen bir forma fosforile olur. Hücrelerde inositol fosfolipitlerin metabolizmasında rol oynar ve hücre proliferasyonu, farklılaşması ve sinyal iletimi gibi hayati hücresel fonksiyonların önemli bir düzenleyicisidir [ 30 ].
İncelenen tıbbın lökositlerin proliferatif aktivitesi üzerindeki yerleşik etkisinin Galega officinalisekstraktındaki yağ asitlerinin varlığı ile ilişkili olabileceği varsayılabilir [ 17 ]. Ekzojen olarak yağ asitleri eklendiğinde, konkanavalin A'ya (Con A) yanıt olarak tam kandaki lökositlerin çoğalmasını baskılar. Linolenik asit bakımından zengin beslenme sıçanları, diğer bazı diyetlerin beslenmesine kıyasla dalak lenfosit proliferasyonunu azaltır. Ek olarak, insan diyetinde artan miktarda linolenik asitin Con A ile uyarılan lenfosit proliferasyonunda önemli bir azalmaya neden olduğu tespit edilmiştir [ 31 , 32]. Lenfositler, yağ asitlerini lipitlerine kolayca dahil eder ve fazla bir yağ asidinin varlığı, belirli bir yağ asidinin birikmesine ve sonuç olarak plazma membran yağ asidi kompozisyonunun modifikasyonuna ve membran akışkanlığının değiştirilmesine yol açabilir. Bu tür değişiklikler proliferasyonda gözlenen azalmaya neden olabilir [ 33 ]. İncelenen ekstraktta önemli miktarda bulunan yağ asitleri, özellikle a-linolenik asit [ 17 ], lenfositler ve monositler tarafından IL-1 ve TNF üretimini azaltır [ 34 , 35]. Diyet n-3 yağ asitleri tarafından TNF-a ve IL-1 sentezinin inhibisyon mekanizması bilinmemekle birlikte, eikosanoid aracılar içerebilir, çünkü n-6 eikosanoid sentezi n-3 yağ asitleri tarafından inhibe edilebilir ve n-6 eikosanoidler, sitokin sentezi [ 36 ].
İmmünokompetan hücrelerin proliferatif aktivitesinde değişikliklere neden olan bir başka Galega officinalisekstresi bileşeni flavonoidlerdir [ 17 ]. Flavonoidlerin anti-enflamatuar etkileri, lenfositlerin proliferatif yanıtını inhibe etme yetenekleri ile bağlantılı olabilir [ 37 ]. Flavonoidler hem sitosolik hem de membran tirozin kinazı inhibe eder. Tirosin 3-monoksijenaz kinaz gibi integral membran proteinleri, enzim katalizi, membranlar arasında taşınması ve hormonların ve büyüme faktörlerinin reseptörleri olarak işlev gören sinyallerin transdüksiyonu ve ATP sentezinde enerji transferi gibi çeşitli fonksiyonlarda yer alır. Bu proteinlerin inhibisyonu, hücre büyümesinin ve proliferasyonunun inhibisyonu ile sonuçlanır [ 38]. Ayrıca birçok flavonoidin TNF-α üzerinde inhibe edici etkiye sahip olduğu gösterilmiştir [ 39]. Son çalışmalar, bazı flavonoidlerin, özellikle flavon türevlerinin, anti-enflamatuar aktivitelerini kısmen en azından siklooksijenaz-2, indüklenebilir nitrik oksit sentaz ve birkaç pivotal sitokin gibi proenflamatuar gen ekspresyonunun modülasyonu ile ifade ettiğini göstermiştir. Flavonoidlerin kimyasal yapılarına bağlı olarak farklı etki mekanizmaları vardır. Muhtemelen hücresel makinelerin birden fazla bölgesinde etkili olan birden fazla hücresel mekanizmaya sahiptirler, ancak flavonoidler tarafından anti-enflamasyona en önemli katkıda bulunanlar, eikosanoid üreten enzimler ve proenflamatuar moleküllerin ekspresyonu üzerindeki etki gibi görünmektedir. Önemli kısımlar C-2,3-çift bağ, A-halka 5,7-hidroksil grupları ve B-halka 4p- veya 3p, 4p-hidroksil gruplarıdır. Flavonollerdeki gibi C-3 hidroksil grubu, LOX inhibisyonu ve oral anti-enflamatuar aktivite için uygundur. Flavonlar (C-3- hidroksil grubu olmadan) proinflamatuar gen ekspresyonunu daha güçlü bir şekilde düzenler [40].
Fitol, ekstraktın TNF-a miktarını etkileyebilecek önemli bir bileşenidir [ 17 ]. Bu bileşik, anti-enflamatuar bir etki yaptı ve TNF-a ve IL-1β seviyelerini azaltarak polimorfonükleer hücre göçünü inhibe etti [ 41 ].
Galega officinalis ekstraktı bileşenleri arasında skualen, TNF-a içeriği üzerinde modüle edici etkiye sahiptir [ 17 ]. Skualenin TNF-α, IL-1β, IL'nin ortadan kaldırılmasıyla, skualenin reaktif oksijen türlerinin (ROS), nitritlerin ve TNF-a, IL-1β, IL-6 ve IFN-y gibi sitokinlerin hücre içi seviyelerini azalttığı özellikle gösterilmiştir. LPS ile aktive edilen insan nötrofilleri ve monositlerinde -6, IFN-y, iNOS ve COX-2 gen ekspresyonu [ 42 ].
Ayrıca Galega officinalis özütü, aralarında kampesterol ve stigmasterol olmak üzere çok sayıda bitki sterolü içerir [ 17 ]. Bu bileşenlerin TNF-a üretiminin azaltılmasına da katkıda bulunduğu araştırılmıştır [ 43 ].
DM'li hayvanlara incelenen ekstrakt uygulama koşulları altında TNF-a içeriğinin azaltılması da a-amyrin'den kaynaklanabilir [ 17 ]. Aslında a, p-amirinin proenflamatuar sitokinler TNF-a, IL-1b ve IL-6'nın üretimini / salımını büyük ölçüde önlediği gösterilmiştir. CB1R ve CB2R antagonistleri α, β-amyrin'in anti-enflamatuar etkilerini önemli ölçüde önlediğinden bu etki kannabinoid sisteminin aktivasyonuna açıkça bağlıydı [ 44 ].
İmmünokompetan hücrelerin çoğalmasındaki değişiklikler, diyabet de dahil olmak üzere vücut bağışıklık savunmasının ihlali anlamına gelir. Polimorfonükleer nötrofiller (PMN), doğal ve adaptif bağışıklık arasındaki bağlantıyı kurar ve antibakteriyel savunmalarda önemli bir rol oynar. Araştırmacılar, PMN'nin fagositozu ve bakterisidal aktivitesinin DM tip 1 koşulu altında bozulduğunu tespit etmişlerdir [ 1].
Nötrofilde bulunan bakterisidal ajanlar arasında, granüllerde ve hücrenin metabolik ürünlerinde bulunan enzimler vardır. Nötrofil zarının invajinasyonu ve bakteri veya bağışıklık kompleksinin yutulmasından sonra, azurofilik ve spesifik granüller yeni oluşan vakuol ile kaynaşır ve içeriklerini boşaltır. Mikrop öldürme oksijene bağlı veya bağımsız olabilir. Oksijene bağımlı olmayan mekanizmalar, granüllerde bulunan enzimlerin, örneğin antibakteriyel katyonik proteinler, lizozim, çeşitli proteazlar ve laktoferrinin doğrudan etkileri gibi etkisini içerir. Oksijene bağlı mekanizmalar yine iki tiptedir: miyeloperoksidaza bağımlı ve miyeloperoksidazdan (MPO) bağımsız. Nötrofilin oksidatif cevabı, moleküler oksijen ve hidrojen peroksitin serbest radikallere dönüşmesine neden olur,2 • - ), hidroksil (OH radikalini • ) ve muhtemelen tekli oksijen (O 2 • ). Bu oksijen aktif metabolitleri halojenür iyonları ile bir araya bakteri ve mantar ve hidrojen peroksit için toksiktir (Cl - , Br - ) miyeloperoksidaz tarafından, özellikle etkili bir mikrop öldürücü madde, [olur 45 ].
Mikroorganizma öldürmenin oksijene bağlı mekanizmalarının bir parçası olarak PMN'deki MPO miktarını da araştırdık. MPO, gram-pozitif ve gram-negatif bakterilerin yanı sıra maya ve mantarlara karşı güçlü ve geniş spektrumlu mikrobisidal etki gösterir. Memeli peroksidazlar arasında, MPO H | katalize etmek kabiliyeti açısından benzersizdir 2 O 2 Cl bağımlı oksidasyonunu - OCl için - . Bu tür haloperoksidaz aktivitesi, etkili mikropların öldürülmesi için gereklidir. H şartına ek olarak 2 O 2OCl için - üretimi, H 2 O 2 doğrudan OCl ile reaksiyona girer -güçlü bir elektrofilik oksijenleyici ajan olan tekli moleküler oksijen üretmek için. MPO'nun mikrobisidal etkisi, yüksek derecede eksozonik oksijenasyon reaksiyonları içerir [ 46 ].
DM'li hayvanlardan nötrofiller tarafından artan MPO üretimi, lökositlerin aracılık ettiği vasküler hasarda önemli bir rol oynayabilir. Nötrofilik granülositlerde oluşan ve onlardan atılan aşırı MPO miktarı, çeşitli mekanizmalar yoluyla damar duvarlarıyla etkileşime girebilir - yani, endotelyal hücreler arasında bağlanma ve transsitoz, HOCl ve HOBr gibi güçlü oksidan, nitrik oksit oksidasyonu ve tirozin nitrasyonu üretir. Bu nihayetinde kardiyovasküler sistem hastalıklarının gelişimine aracılık edebilir [ 47 , 48 ].
Gelen keçisedefi MPO üretim ekstre engelleyici etki varlığı ve fitol [sinerjistik etkisi ile önceden tespit edilebilir 41 ], flavonoidler [ 49 ], skualen [ 42 ], fitosteroller [ 50 ] ve amirin [ 44 ].
Oksijene bağımlı olmayan mikrop öldürme mekanizmalarının bir parçası olarak antibakteriyel katyonik proteinlerin miktarını araştırdık. Antimikrobiyal katyonik proteinler azurofil granüllerinden phagosomlara ulaşır. Katyonik proteinler zarlarda iyon gözenekleri oluşturabilir ve bakteri, mantar ve bazı virüsler dahil olmak üzere çeşitli mikroorganizmaları öldürebilir. PMN granüllerinde bulunan majör antimikrobiyal katyonik proteinler defensindir [ 51]. Defensin sentezi ve salınımı mikrobiyal sinyaller, gelişimsel sinyaller ve sitokinler ve bazı durumlarda dokuya özgü bir şekilde nöroendokrin sinyaller tarafından düzenlenir. Fagositoz sırasında, defensin bakımından zengin birincil granüller, yüksek konsantrasyonlarda defensin ürettikleri fagositik vakuollerle kaynaşır. Hedef zarların geçirgenleştirilmesi, defensinlenmiş antimikrobiyal aktivite ve sitotoksisitede çok önemli bir adımdır. Geçirgenleştirmeye müdahale eden koşullar bakteriyel canlılık kaybını da önledi, bu da geçirgenliğin bakteri öldürme için gerekli olduğunu gösterir [ 52 ].
Yönetimleri keçisedefi özü [bileşiminde flavonoidlerin varlığı ile ilişkilendirilebilir katyonik proteinlerin ACC azaltılması sebebi özüt 17 ]. Galega officinalisözütünün inhibe edici etkisinin , flavonoidlerin varlığından kaynaklandığı varsayılabilir . Bu maddelerin katyonik protein içeriği üzerindeki tam mekanizması belirlenmemiştir, ancak quercetin'in (10-50 μM'de) eozinofil katyonik protein sekresyonunun% 70-90 inhibisyonuna neden olduğu gösterilmiştir [ 53].
Diyabetes mellitus koşulu altında kronik hiperglisemi, güçlü pro-apoptotik etki gösteren ürünlerin oluştuğu oksidatif-nitratif strese yol açar. Bu yüzden çalışmamızın bir sonraki aşaması, DM'li sağlıklı sıçanların ve hayvanların lenfosit apoptozunun özelliklerini Galega officinalis özü uygulamasının arka planında incelemekti .
Akış sitometrisi yöntemiyle, apoptozun en eski olayları, yaşayabilirlik ile hücre ölümü arasındaki sınırların geçişi hakkında karar verildiği aşama kaydedilerek belirlenebilir [ 54 ]. Apoptozdan önceki en erken olay, ROS yüksek seviyelerinin neden olduğu hücre zarı lipidinin oksidasyonudur. Bu öncelikle zarlarda esas olarak fosfatidilserin ile temsil edilen fosfolipitlerin bileşimindeki çoklu doymamış yağ asitlerine karşılık gelir. PS hidroperoksitlerin oluşumu, hücre iskelet proteinleri - anksinler ile etkileşimini ihlal eder ve oksitlenmiş PS'nin içten dış plazma membranında translokasyonunu kolaylaştırır. Bu nedenle apoptoz indüksiyonu durumunda PS zarın dış tarafında görülür [ 55 , 56 ].
Membranın dış yüzeyi üzerindeki PS ekspresyonu, apoptozun erken aşamalarından hücrenin tamamen bozulmasına kadar meydana gelir. Normal canlı hücrelerin apoptoza hazır olanlardan ayırt edilmesi için kullanılır.
Diyabet koşulu altında FITC ve PI ile etiketlenmiş annexin V'nin bağlanma yoğunluğundaki değişiklikler, membran bütünlüğü ihlali belirtisidir ve apoptozun erken ve geç özellikleri olan hücre sayısındaki artışı gösterir.
Lökositlerin apoptozu iki şekilde ortaya çıkabilir: ekstrinsik veya ölüm reseptör yolu ve intrinsik veya mitokondriyal yol [ 57 , 58 ].
Açıktır ki, daha önce bize kurduğu lökositlerin [oksijen ve azot içeriği aktif formlarının artış 59 , mitokondri ve çekirdek zarları da dahil olmak üzere hücre içi yapılarda, ciddi ölçüde zarar etkiye sahip apoptozu hızlandıran olan]. ROS etkisi altında mitokondriyal membranların imhası, apoptozun intrinsik veya mitokondriyal yolunu başlatabilir. Buradaki anahtar olay, sitoplazmada adaptör protein Apaf'a katılan mitokondri intermembran boşluğundan sitokrom c'nin salınmasıdır. Bu, bu proteinin oligomerizasyonuna ve apoptozom oluşumuna neden olur. İkincisi, belirli bir noktadan itibaren apoptoz sürecini geri döndürülemez hale getiren proteolitik kaskadın oluşmasıyla sonuçlanan inisiyak provaspazları aktive eder [ 60 ].
Bununla birlikte, deneylerimizde gözlemlediğimiz apoptozun ekstrinsik veya ölüm reseptörü yolu ile de aktive olduğunu dışlamıyoruz. DM koşul altında proinflamatuar sitokin, TNF-a içeriğinin önemli ölçüde serumu (Şek. Artar (Şekil 3).3 ). Ölüm reseptörleri olarak adlandırılan transmembran proteinleri ile reaksiyona giren TNF-a'nın, apoptotik kaskadı adaptör proteinler yoluyla tetikleyen prokazazları çektiği ve aktive ettiği bilinmektedir [ 61 ].
Galega officinalis ekstraktının bizim tarafımızdan keşfedilen DM'deki lenfosit apoptoz süreci üzerindeki düzeltici etkisi, TNF-α içeriğindeki değişikliklerle korelasyon gösterdi. Lenfositlerin apoptotik süreçlerinin şiddeti, TNF-a içeriğinin değişiminin doğası ile tutarlıdır. Ekstraktın koruyucu etkisinin, büyük ölçüde reseptör aracılı apoptozun inhibisyonu yoluyla gerçekleştirilmesi mümkündür. Galega officinalis gerçeğiekstrakt lenfositlerdeki oksidatif stresi önleme yeteneğine sahiptir ve düzeltme etkisinin ek mekanizmalarının varlığı hakkında tanıklık edebilir. Özellikle, ekstrakt antiapoptotik etki gerçekleştirmenin başka bir yönü, mitokondriyal apoptoz yolunun inhibisyonu olabilir - oksidatif stresin bir sonucu olarak aktive edilen bir süreç.
Galega officinalis ekstraktının yerleşik antiapoptotik etkisi , bileşenlerinin antidiyabetik, antioksidan ve antienflamatuar özelliklerinden kaynaklanır. Özellikle, ekstraktın bileşimi potansiyel olarak hipoglisemik (fitol, palmitik asidin etil esteri, fitosteroller - kampesterol ve stigmasterol, kinazolin türevleri), antioksidan (fitol, flavonoidler, E vitamini) ve anti-enflamatuar ( flavonoidler, linolenik asidin metil esteri, a-amyrin) etkisi [ 17 ]. Sonuçlar
Diyabetes mellitus gelişimine nötrofil ve lenfosit proliferasyonunun ihlali, granülosit MPO'nun aktivitesinin artması ve lenfosit apoptozunun artması eşlik etti. Uygulanması keçisedefi DM koşulu altında özü nötrofil kemik iliği havuzunun restorasyon lenfoblastlar sayısının azalmasını sağlamaktadır ve lenfositlerin Apoptoz prosesinde inhibisyonuna neden olur. Bir Galega officinalis kullanarak nötrofil fonksiyonel yeterliliğinin normalleştirilmesi hastalığın seyrini artırabilir ve hipoglisemik etkilerine ek olarak diyabet komplikasyonlarının gelişmesini ve ilerlemesini önleyebilir.
Teşekkür
Uygulanamaz Finansman
Uygulanamaz Veri ve malzemelerin kullanılabilirliği
Mevcut çalışmanın ham verileri ve materyalleri makul talep üzerine ilgili yazardan temin edilebilir. KısaltmalarYazar katkılarıACC Ortalama sitokimyasal katsayı BrdU 5-bromo-2'-deoksiüridin CFU-GM Granülosit-makrofaj progenitör hücreleri A ile Konkanavalin A DM Diyabetes mellitus FSC İleri saçılan ışık GM-CSF Granülosit-makrofaj koloni uyarıcı faktör IFN İnterferon IL İnterlökin IRS-1 İnsülin reseptörü substratı-1 MPO Myeloperoksidaz PI Propidyum iyodür PMN Polimorfonükleer nötrofil PS Fosfatidilserin ÖVGÜ Reaktif oksijen türleri SSC Yan dağınık ışık Th1 Tip 1 T yardımcı hücreler TNF Tümör nekroz faktörü
Bu çalışma NS tarafından tasarlandı, yönetildi ve koordine edildi; HH, baş araştırmacılar olarak hareket eder ve projenin tüm yönleri için kavramsal ve teknik rehberlik sağlar. MN ve MS deneyleri planladı ve gerçekleştirdi ve verileri analiz etti. Makale MN, MS ve HH tarafından yazılmış ve NS tarafından yorumlanmıştır. Tüm yazarlar son makaleyi okudular ve onayladılar. notlar
Etik onayı ve katılma onayı
Deneyler, I Ulusal Biyoetik Kongresi'nde (Kiev, 2001) ve Deneysel ve Diğer Bilimsel Amaçlarla Kullanılan Omurgalı Hayvanların Korunmasına İlişkin Avrupa Sözleşmesi'nde (Strazburg,) “Hayvanlar üzerinde deneylerin genel etik ilkeleri” ne göre yapılmıştır. Fransa, 1986). Lviv Ivan Franko Ulusal Üniversitesi etik kurulundan onay alındı. Yayın için onay
Uygulanamaz Rakip ilgi alanları
Yazarlar hiçbir çıkarları olmadığını beyan ederler.
Yayıncının Notu
Springer Nature, yayınlanan haritalarda ve kurumsal bağlantılarda yer alan yargı iddiaları konusunda tarafsız kalmaktadır. Katılımcı Bilgileri
Mariia Nagalievska, Telefon: +380676963530, E-posta: moc.liamg@ajiramhk .
Mariya Sabadashka, E-posta: au.atem@akhsadabas.m.
Halyna Hachkova, E-posta: moc.liamg@gatevelk .
Nataliia Sybirna, E-posta: moc.oohay@ailatan_anribys .
Makale bilgileri
BMC Tamamlayıcı Alternatif Med . 2018; 18: 4.
Çevrimiçi yayın tarihi 2018 Ocak 8. doi: 10.1186 / s12906-017-2079-3
PMCID: PMC5759189
PMID: 29310643
Mariia Nagalievska , Mariya Sabadashka , Halyna Hachkova,ve Nataliia Sybirna
Ivan Franko Lviv Ulusal Üniversitesi, Biyoloji Fakültesi, Biyokimya Bölümü, 4, Hrushevskyi St, Lviv, 79005 Ukrayna
Mariia Nagalievska, Telefon: +380676963530, E-posta: moc.liamg@ajiramhk .
Katılımcı Bilgileri .
Sorumlu yazar.
6 Nisan 2017'de alındı; Kabul Edildi 2017 Aralık 29.
Telif Hakkı © Yazar (lar). 2018
Açık Erişim Bu makale, vermeniz koşuluyla herhangi bir ortamda sınırsız kullanım, dağıtım ve çoğaltmaya izin veren Creative Commons Atıf 4.0 Uluslararası Lisansı ( http://creativecommons.org/licenses/by/4.0/ ) koşulları altında dağıtılmıştır. orijinal yazar (lar) ve kaynağa uygun krediyi ekleyin, Creative Commons lisansına bir bağlantı sağlayın ve değişikliklerin yapılıp yapılmadığını belirtin. Creative Commons Public Domain Dedication feragatnamesi ( http://creativecommons.org/publicdomain/zero/1.0/ ), aksi belirtilmedikçe bu makalede sunulan veriler için geçerlidir.
BMC Tamamlayıcı ve Alternatif Tıp makaleleri burada BioMed Central'ın izniyle sağlanmıştır.
Referanslar
1. Nurun Nabi AHM, İslam LN, Rahman MM, Biswas KB. Streptozotosin kaynaklı tip 1 diyabetik sıçanlarda polimorfonükleer Nötrofil işlev bozuklukları. J Biochem Mol Biol. 2005; 38 (6): 661-667. [ PubMed ] [ Google Akademik ]
2. Geerlings SE, Hoepelman AMAÇ. Diyabetes mellitus (DM) olan hastalarda immün disfonksiyon FEMS Immunol Med Microbiol. 1999; 26 : 259-265. [ PubMed ] [ Google Akademik ]
3. Moutschen MP, Scheen AJ, Lefebvre PJ. Diyabetes mellitusta bağışıklık yanıtlarının bozulması: diyabetik hastaların spesifik enfeksiyonlara karşı artan duyarlılığı ile ilişkili faktörlerin ve mekanizmaların analizi. Diyabet Metab. 1992; 18 : 187-201. [ PubMed ] [ Google Akademik ]
4. Rivera A, Siracusa MC, Yap GS, Gause WC. Doğal hücre iletişimi patojene özgü bağışıklığı tekmelemeye başlar. Nat Immunol. 2016; 17 (4): 356-363'te açıklanmaktadır. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
5. Gasteiger G, Rudensky AY. Doğuştan gelen adaptif lenfositler arasındaki etkileşimler. Nat Rev Immunol. 2014; 14 : 631-639. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
6. Khokhla M, Kleveta G, Kotyk A, Skybitska M, Ya C, Sybirna N. Galega Officinalis L. Annales Universitatis Mariae Curie – Sclodowska'nın şeker düşürücü etkileri . 2010; 4 (30): 177-182. [ Google Akademik ]
7. Khokhla MR, HIa K, IaP C, Skybitska MI, Sybirna NO. Deneysel diabetes mellitus tip 1 ve Galega Officinalis kabulü koşullarında sıçanların periferik kanının sitolojik ve biyokimyasal özellikleri. Studia Biologica. 2012; 6 (1): 37-46. [ Google Akademik ]
8. Khokhla M, Kleveta G, Lupak M, Skybitska M, Chajka Y, Sybirna N. Curr Sorunları Pharm Med Sci. 2013; 26(4): 393-397. [ Google Akademik ]
9. Sybirna N, Hachkova H, Khokhla M.Galega officinalisözütünün alkaloid olmayan fraksiyonunun antidiyabetik etki ile hazırlanması için bir yöntem , 25.02.2015 tarihli patent 8 96839.
10. Sybirna N, Vildanova R Shulga, O, Sheglova N, Karpenko, O, Khokhla E, Hachkova H, dışı alkaloid fraksiyonuna dayanan phytopreparation hazırlamak için Lupak M. bir yöntem keçisedefi 25.08.2015 özüt patent №101202 .
11. Ryan DH, Cohen HJ. Hematoloji: temel prensipler ve uygulama. 3. New York, NY, ABD: Churchill Livingstone; 2000. [ Google Akademik ]
12. Sybirna NO, Burda VA, Chaika IP. Kan sistemi araştırma yöntemleri: ders kitabı, Ivan Franko LNU'nun yayın merkezi, Lviv, L. 2005. [ Google Akademik ]
13. Shubych MH. Bromofenol mavisi kullanılarak lökositlerin sitoplazmasında katyonik proteinin tanımlanması. Tsytolohyia. 1974; 10 : 1321-1322. [ Google Akademik ]
14. Graham RC, Karnovsky MJ. Fare böbreğinin proksimal tübüllerinde enjekte edilmiş yaban turpu peroksidazının emiliminin erken aşamaları: yeni bir teknikle altyapı sitokimyası. J Histochem Cytochem. 1966; 14 (4): 291-302. [ PubMed ] [ Google Akademik ]
15. Astaldi G, Verga L. Lenfatik lösemi hücrelerinin glikojen içeriği. Açta Haemat. 1957; 17 : 129-135. [ PubMed ] [ Google Akademik ]
16. Fadok VA, Voelker DR, Campbell PA, Cohen JJ, Bratton DL, Henson PM. Fosfatidilserinin apoptotik lenfositlerin yüzeyi üzerinde maruz kalması, makrofajlar tarafından spesifik tanınmayı ve çıkarılmasını tetikler. J Immunol. 1992; 148 (7): 2207-21616. [ PubMed ] [ Google Akademik ]
17. Khokhla M, Kleveta H, Lupak M, Kaniuka O, Ia C, Skybitska M, Sybirna N. Galega Officinalis ekstrakt bileşenlerinin araştırılması. L'viv Üniversitesi'nden Visnyk. Biyolojik Ser. 2013; 62 : 55-60. [ Google Akademik ]
18. Lontchi-Yimagou E, Sobngwi E, Mart TE, Kengne AP. Diabetes mellitus ve iltihap. Curr Diab Temsilcisi 2013; 13 (3): 435-444. [ PubMed ] [ Google Akademik ]
19. Erbağcia AB, Tarakçioğlua M, Coşkunb Y, Sivaslib E, Namidurua ES. Tip I diyabetes mellituslu çocuklarda inflamasyon aracıları: tip I diyabetik çocuklarda sitokinler. Clin Biochem. 2001; 34 (8): 645-650. [ PubMed ] [ Google Akademik ]
20. Bhattacharya P, Thiruppathi M, Elshabrawy HA, Alharshawi K, Kumar P, Prabhakar BS. GM-CSF: otoimmüniteyi baskılayabilen bir immün modülatör sitokin. Sitokin. 2015; 75 (2): 261-271. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
21. Genel bağışıklık sönümlemesi tip 1 diyabet tanısında bozulmuş metabolizma ile ilişkilidir.Rydén A, Ludvigsson J, Fredrikson M, Faresjö M. Pediatr Arş. 2014; 75 (1): 45-50. [ PubMed ] [ Google Akademik ]
22. Alnek K, Kisand K, Heilman K, Peet A, Varik K, Uibo R.Yeni teşhis edilen tip 1 diyabetli hastalarda artan kan büyüme faktörleri, Proinflamatuar sitokinler ve Th17 sitokinleri. PLoS One. 2015; 10 (12): 1-16. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
23. Christen U, Wolfe T, Mohrle U, Hughes AC, Rodrigo E, Yeşil E, Flavell RA, von Herrath MG. Tip 1 diyabette TNF-a için ikili bir rol: adacık spesifik ekspresyon, patojenez sırasında geç indüklendiğinde ancak erken olmadığında devam eden otoimmün süreci ortadan kaldırır. J Immunol. 2001; 166 : 7023-7032. [ PubMed ] [ Google Akademik ]
24. Knobler H, Schattner A. TNF-a, kronik hepatit C ve diyabet: yeni bir üçlü. QJ Med. 2005; 98 : 1-6. [ PubMed ] [ Google Akademik ]
25. Drutskayaa MS, Ortizb M, Liepinshb DJ, Kuprasha DV, Nedospasova SA, Kellerb JR. Tümör nekroz faktörünün in vitro görülen hematopoez üzerindeki inhibitör etkileri, TNF eksikliği olan farelerde hem kararlı hem de multotent progenitörlerin sayısının artmasına çevrilir. Exp Hematol. 2005; 33 : 1348–1356. [ PubMed ] [ Google Akademik ]
26. Walker LSK, von Herrath M. CD4 Tip 1 diyabette T hücre farklılaşması. Clin Exp Immunol. 2016; 183 (1): 16-29. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
27. Lien E, Ingalls RR. Geçiş ücreti benzeri reseptörler. Crit Care Med. 2002; 30 : S1 – S11. [ PubMed ] [ Google Akademik ]
28. Zganiacz A, Santosuosso M, Wang J, Yang T, Chen L, Anzulovic M, Alexander S, Gicquel B, Wan Y, Bramson J, Inman M, Xing Z. TNF-α, tip 1 bağışıklığın kritik bir negatif regülatörüdür hücre içi bakteriyel enfeksiyon sırasında aktivasyon. J Clin Invest. 2004; 113 (3): 401–413. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
29. Pashazadeh M, Mirzazadeh J, Alizadeh A. Fabaceae (Galega Officinalis L.) tüketiminin streptozotosin kaynaklı diyabetik sıçanlarda kan şekeri, lipit ve lipoprotein seviyeleri üzerindeki etkisi. Boğa. Env.Pharmacol. Life Sci. 2015; 4 (6): 127-132. [ Google Akademik ]
30. Şarkıcılar GL, Servida F, Fracchiolla NS, Ricci C, Borsotti C, Colombo G, Soligo D. Br J Haematol. 2002; 117 : 577-587. [ PubMed ] [ Google Akademik ]
31. Thies F, Nebe-von-Caron G, Powell JR, Yaqoob P, Newsholme EA, Calder PC. G-Linolenik asit veya balık yağı ile diyet takviyesi, sağlıklı yaşlı insanlarda T lenfosit proliferasyonunu azaltır. J Nutr. 2001; 131 (7): 1918-1927. [ PubMed ] [ Google Akademik ]
32. Yaqoob P, Newsholme EA, Calder PC. Yağ asitlerinin lökosit altkümeleri ve sıçan tam kanındaki proliferasyon üzerindeki etkisi. Nutr Res. 1995; 15 (2): 279-287. [ Google Akademik ]
33. Calder PC, Bevan SJ, Newsholme EA. T-lenfosit proliferasyonunun yağ asitleri tarafından inhibisyonu, eikosanoidden bağımsız bir mekanizma yoluyla olur. İmmünoloji. 1992; 75 : 108-115. [ PMC ücretsiz makale ][ PubMed ] [ Google Akademik ]
34. Sravan Kumar G, Das UN, Vijay Kumar K, Madhavi N, Das NP, Tan BKH. N-6 ve n-3 yağ asitlerinin insan lenfositlerinin proliferasyonu ve bunların in vitro TNF-a ve IL-2 salgılanması üzerindeki etkisi. Nutr Res. 1992; 12(7): 815-823. [ Google Akademik ]
35. Calder PC, Yaqoob P, Thies F, Wallace FA, Miles EA. Yağ asitleri ve lenfosit fonksiyonları. Br J Nutr. 2002; 87(1): S31 – S48. [ PubMed ] [ Google Akademik ]
36. Caughey GE, Mantzioris E, Gibson RA, Cleland LG, James MJ. Bitkisel yağ veya balık oi1'den n-3 yağ asitleri ile zenginleştirilmiş insan tümör nekroz faktörü a ve interlökin 1 diyetlerinin üretimi üzerindeki etkisi. J Clin Nutr. 1996; 63 (1): 16-22. [ PubMed ] [ Google Akademik ]
37. Hirano T, Oka K, Kawashima E, Akiba M. İnsan periferik kan lenfositlerinin mitojen kaynaklı proliferasyonunun sentetik ve doğal olarak oluşan flavonoidlerinin etkileri. Life Sci. 1989; 45 (15): 1407-1411. [ PubMed ] [ Google Akademik ]
38. Nijveldt RJ, van Nood E, van Hoorn DEC, Boelens PG, van Norren K, van Leeuwen PAM. Flavonoidler: olası mekanizmaların veya eylemin ve potansiyel uygulamaların gözden geçirilmesi. J Clin Nutr. 2001; 74 : 418-425. [ PubMed ] [ Google Akademik ]
39. Saraf S, Singh MA, Saraf A. Flavonoidler: oksidatif ve UV kaynaklı hücresel hasarlara karşı beslenme koruması. Pharmacog Rev.2007 ; 1 : 30–40. [ Google Akademik ]
40. Kim HP, Oğlu KH, Chang HW, Kang SS. Antienflamatuar bitki Flavonoidler ve hücresel etki mekanizmaları. J Pharmacol Sci. 2004; 96 : 229-245. [ PubMed ] [ Google Akademik ]
41. Silva RO, Sousa FBM, Damasceno SRB, Carvalho NS, Silva VG, Oliveira FRMA, Sousa DP, Aragon KS, Barbosa ALR, Freitas RM, Medeiros JVR. Bir diterpen alkol olan fitol, sitokin üretimini ve oksidatif stresi azaltarak inflamatuar yanıtı inhibe eder. Clin Pharmacol bulundu. 2014; 28 (4): 455-464. [ PubMed ] [ Google Akademik ]
42. Cárdeno A, Aparicio-Soto M, Montserrat-de la Paz S, Bermudez B, FJG M, Alarcón-de-la-Lastra C. Skualen, nötrofillerin aşırı aktivasyonunu modüle etmek için pro- ve anti-inflamatuar aracıları ve yolları hedefler , monositler ve makrofajlar. J Funct Gıdalar. 2015; 14 : 779-790. [ Google Akademik ]
43. Brüll F, Mensink RP, Plat J. Bitki sterolleri: bağışıklık fonksiyonu ve inflamasyonda fonksiyonel lipitler? Clin Lipidol. 2009; 4 (3): 355-365. [ Google Akademik ]
44. Silva KA, Paszcuk AF, Passos GF, Silva ES, Bento AF, Meotti FC, Calixto JB. Kannabinoid reseptörlerinin pentasiklik triterpen a, β-amyrin ile aktivasyonu, farelerde enflamatuar ve nöropatik kalıcı ağrıyı inhibe eder. Ağrı. 2011; 152 (8): 1872-1887. [ PubMed ] [ Google Akademik ]
45. Van Dyke TE, Hoop GA. Nötrofil fonksiyonu ve oral hastalık. Oral Biol Med. 1990; 1 (2): 117-133. [ PubMed ] [ Google Akademik ]
46. Allen RC, Stephens JT. Miyeloperoksidaz mikropları seçici olarak bağlar ve seçici olarak öldürür. Bulaşıcı İmmün. 2011; 79 (1): 474-485. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
47. Gorudko V, Kostevich VA, Sokolov AV, Shamova EV, Buko IV, Konstantinova EE, Vasiliev VB, Cherenkevich SN, Panasenko OM. Nötrofillerin diabetes mellitus ve koroner kalp hastalığında fonksiyonel aktivitesi: Miyeloperoksidazın oksidatif stres genel patolojisi ve Patofizyolojisinin gelişimindeki rolü. Bull Exp Biol Med. 2012; 154 (1): 23-26. [ PubMed ] [ Google Akademik ]
48. Nicholls SJ, Hazen SL. Miyeloperoksidaz ve kardiyovasküler hastalık. Arterioscler Trombos Vasc Biol. 2005; 25 : 1102–1111. [ PubMed ] [ Google Akademik ]
49. Shiba Y, Kinoshita T, Chuman H, Taketani Y, Takeda E, Kato Y, Naito M, Kawabata K, Ishisaka A, Terao J, Kawai Y. Myeloperoksidazın substratları ve inhibitörleri olarak flavonoidler: Aglikon ve metabolitlerin moleküler etkileri. Chem Res Toxicol. 2008; 21 : 1600-1609. [ PubMed ] [ Google Akademik ]
50. Navarro A, De Las HB, Clem AV. Sideritis Foetens'in sterol fraksiyonunun anti-enflamatuar ve immünomodülatör özellikleri. Biol Pharm Bull. 2001; 24(5): 470-473. [ PubMed ] [ Google Akademik ]
51. Suç JM, Lewis RE. İmmünoloji Atlası ikinci baskı. LLC: CRC Basın; 2004. [ Google Akademik ]
52. Ganz T. Defensinler: doğuştan gelen bağışıklığın antimikrobiyal peptitleri. Nat Rev.2003 ; 3 : 710–720. [ PubMed ] [ Google Akademik ]
53. Middleton E. Bitki flavonoidlerinin biyolojik özellikleri: genel bir bakış. Int J Farmakog. 1996; 34 (5): 344-348. [ Google Akademik ]
54. Harada-Shiba M, Kinoshita M, Kamido H, Shimokado K. Oksitlenmiş düşük yoğunluklu lipoprotein, kültürlü insan göbek ven endotel hücrelerinde yaygın ve benzersiz mekanizmalar ile apoptozu indükler. J Biol Chem. 1998; 273 : 9681-9687. [ PubMed ] [ Google Akademik ]
55. Fadok VA, Bratton DL, Warner ML, Henson PM. Fagositler tarafından apoptotik hücrelerin tanınmasında fosfatidilserinin rolü. Cell Death Dyjer 1998; 5: 551-562. [ PubMed ]
56. Fadok V, Rose DM, Pearson A, Ezekewitz RA, Henson PM. Apoptotik hücrelerin fosfatidilserine özgü klerensi için bir reseptör. Doğa. 2000; 405 : 85-90. [ PubMed ] [ Google Akademik ]
57. Şerif EM, Adly AAM, Mohamed HG, Ahmed A. Tip 1 diabetes mellitus patogenezinde lenfosit apoptozu. Mısır J Pediatr Alerji İmmünol. 2008; 6 (2): 57-67. [ Google Akademik ]
58. Otton R, Soriano FG, Verlengia R, Curi R. Diyabet, lenfositlerde apoptozu indükler. J Endokrinol. 2004; 182 : 145-156. [ PubMed ] [ Google Akademik ]
59. Lupak MI, Khokhla MR, GYa H, Kanyuka OP, Klymyshyn NI, YaP C, Skybitska MI, Sybirna NO. Galega Officinalis özütünün alkaloit içermeyen fraksiyonu, deneysel diyabetes mellitus altında oksidatif stresi önler. Ukr Biochem J. 2015; 87 (4): 78-86. [ PubMed ] [ Google Akademik ]
60. Baliga B, Kumar S. Apaf-1 / sitokrom c apoptozom: önemli bir initiatorof kaspaz aktivasyonu mu yoksa sadece bir yan gösteri mi? Hücre Ölüm Farkı. 2003; 10 : 16-18. [ PubMed ] [ Google Akademik ]
61. Deng Y, Ren X, Yang L, Lin Y, Wu X. TNFalfa kaynaklı apoptoz için JNK'ya bağlı bir yol gereklidir. Hücre. 2003; 115 (1): 61-70. [ PubMed ] [ Google Akademik ]Yorum yap
-
Şeker Hastalığı Neden Olur Şeker Hastalığı Nasıl Geçer
Yorum yap
-
Diyabetten (Şeker Hastalığı) Nasıl Kurtulurum Gurmar Nedir Gurmar'ın Faydaları Nedir
Yorum yap
-
Diyabet Neden Olur Hastalığına Ne İyi Gelir Gurmar'ın Faydaları
Yorum yap
Yorum yap