Duyuru

Collapse
No announcement yet.

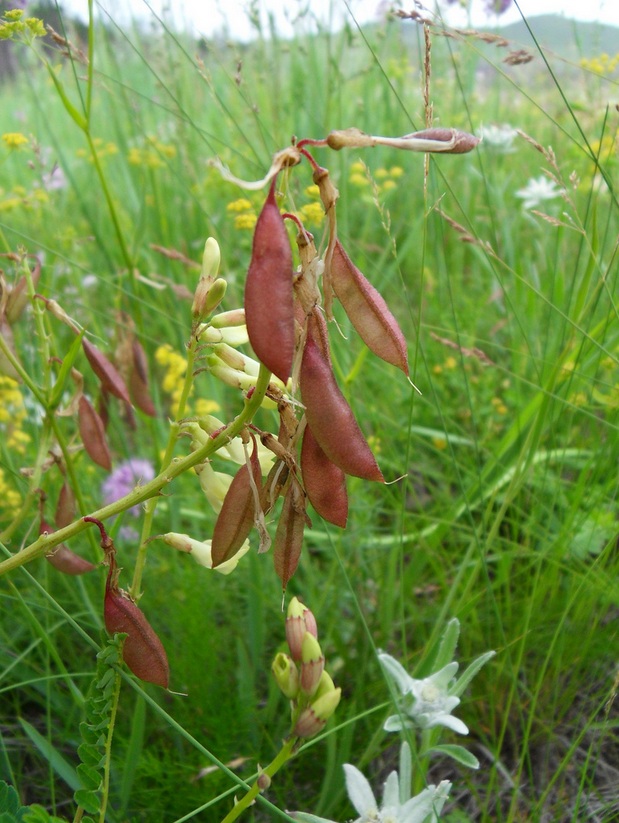
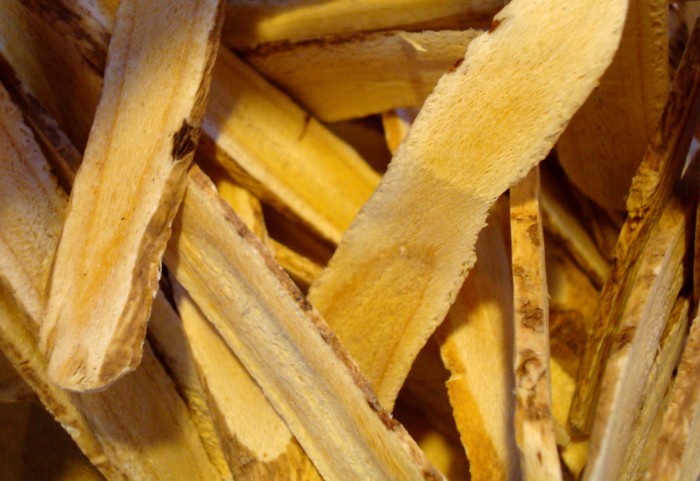
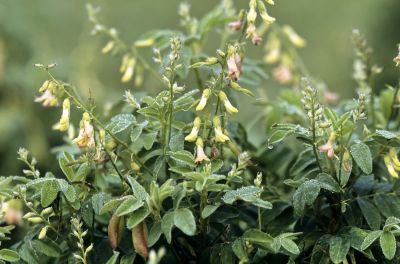
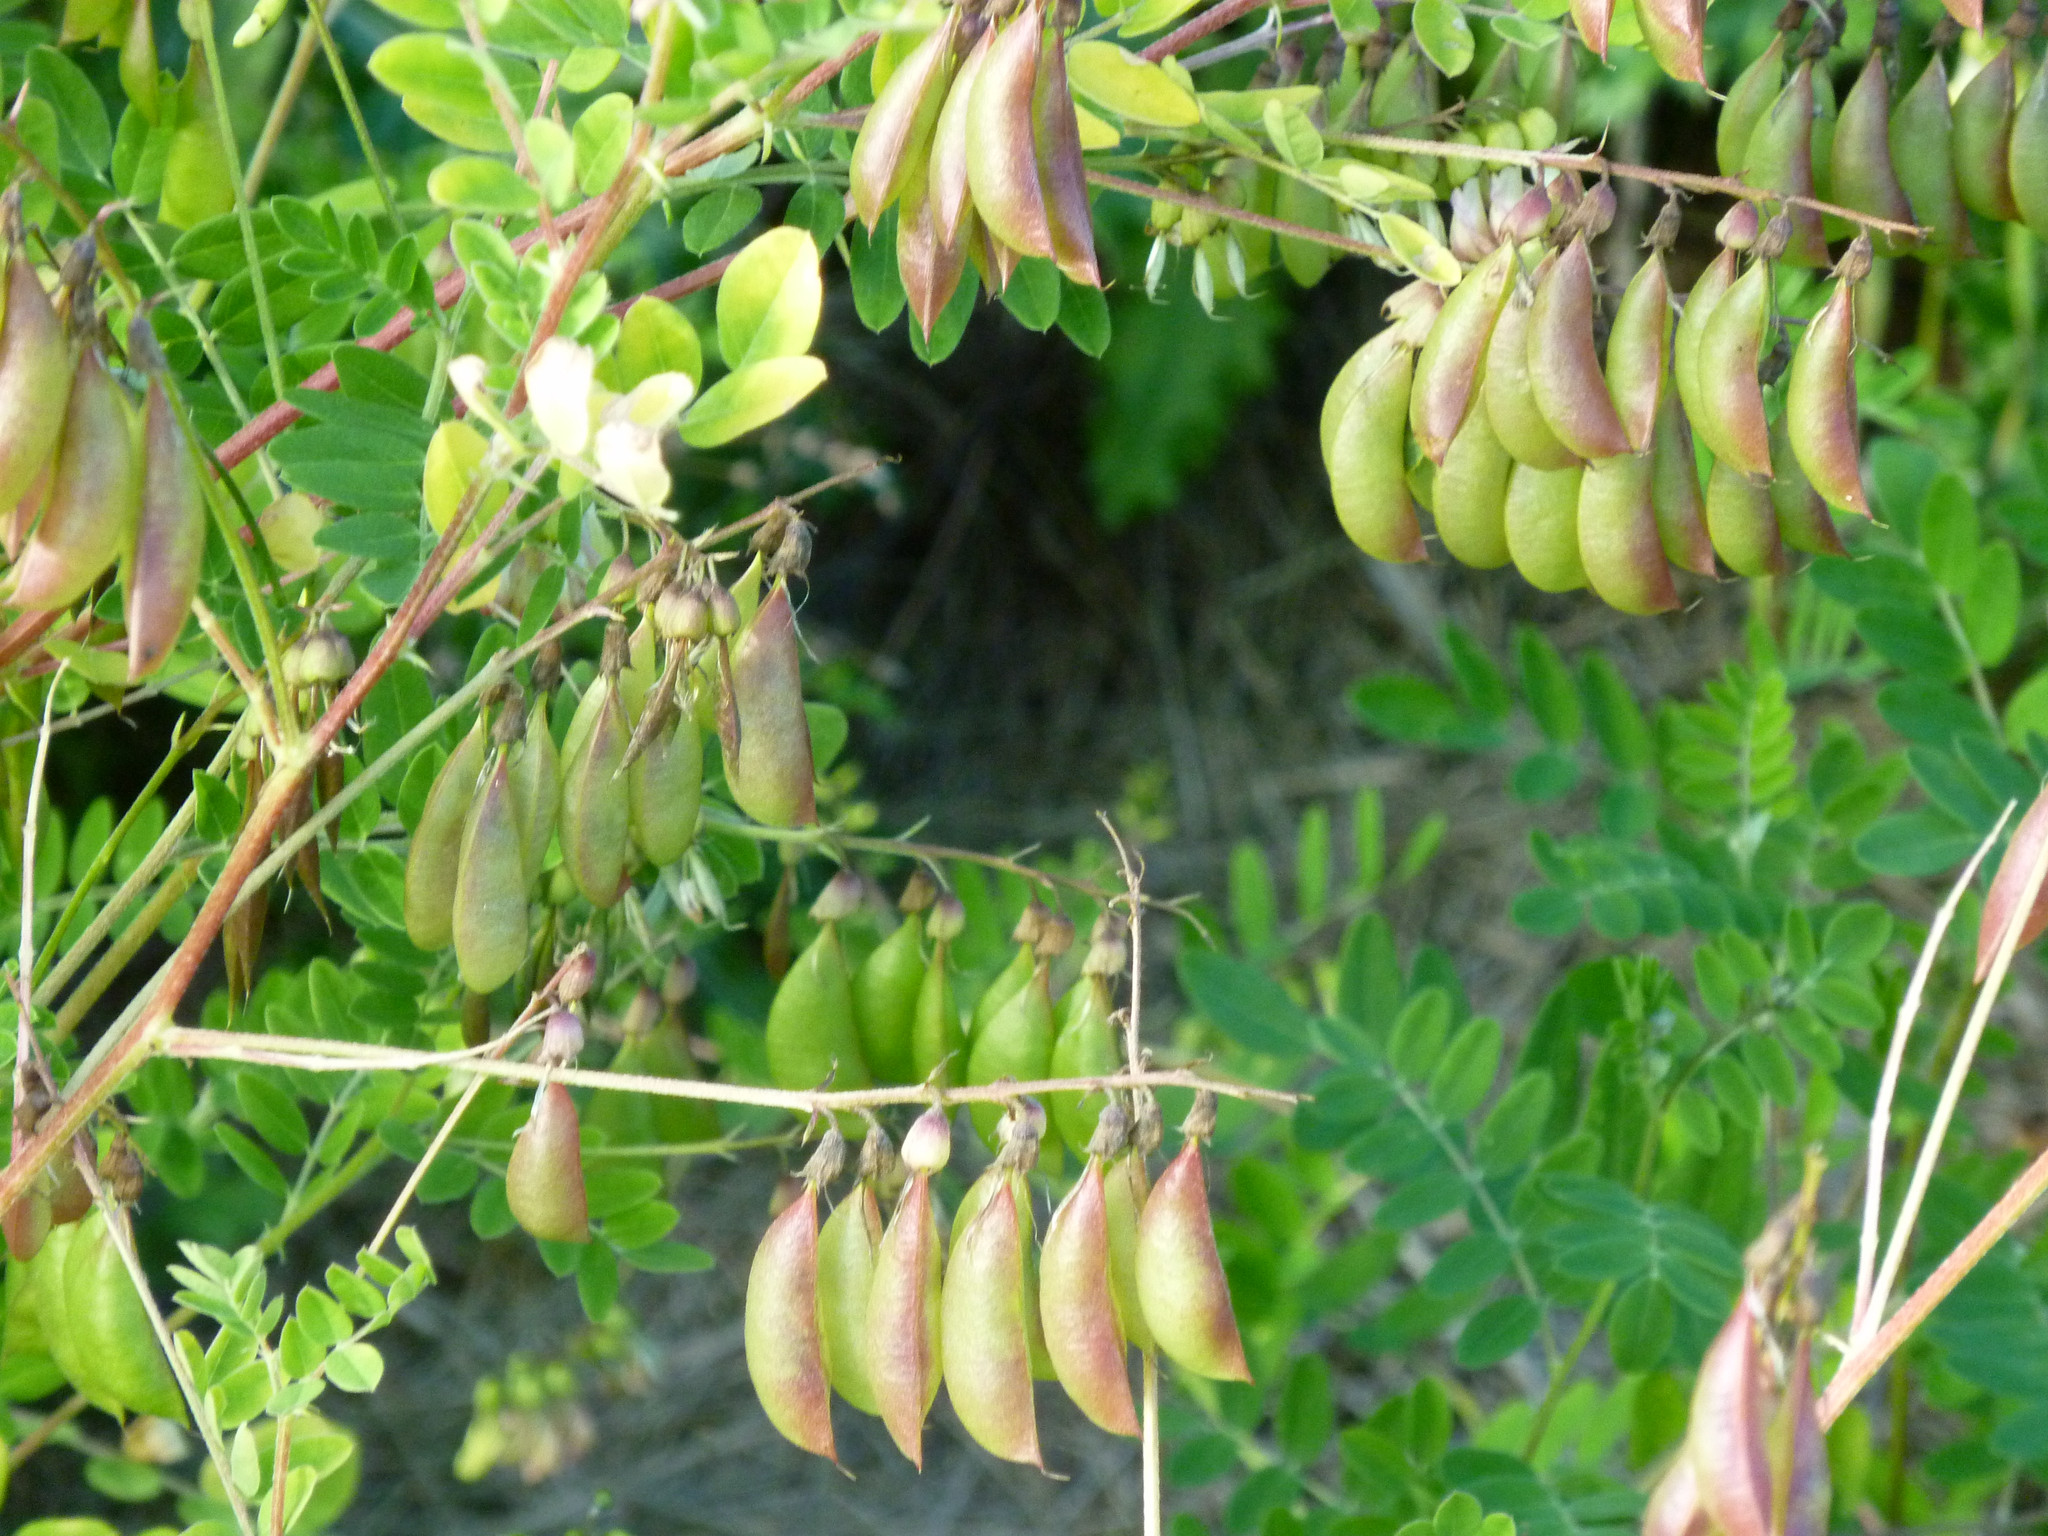
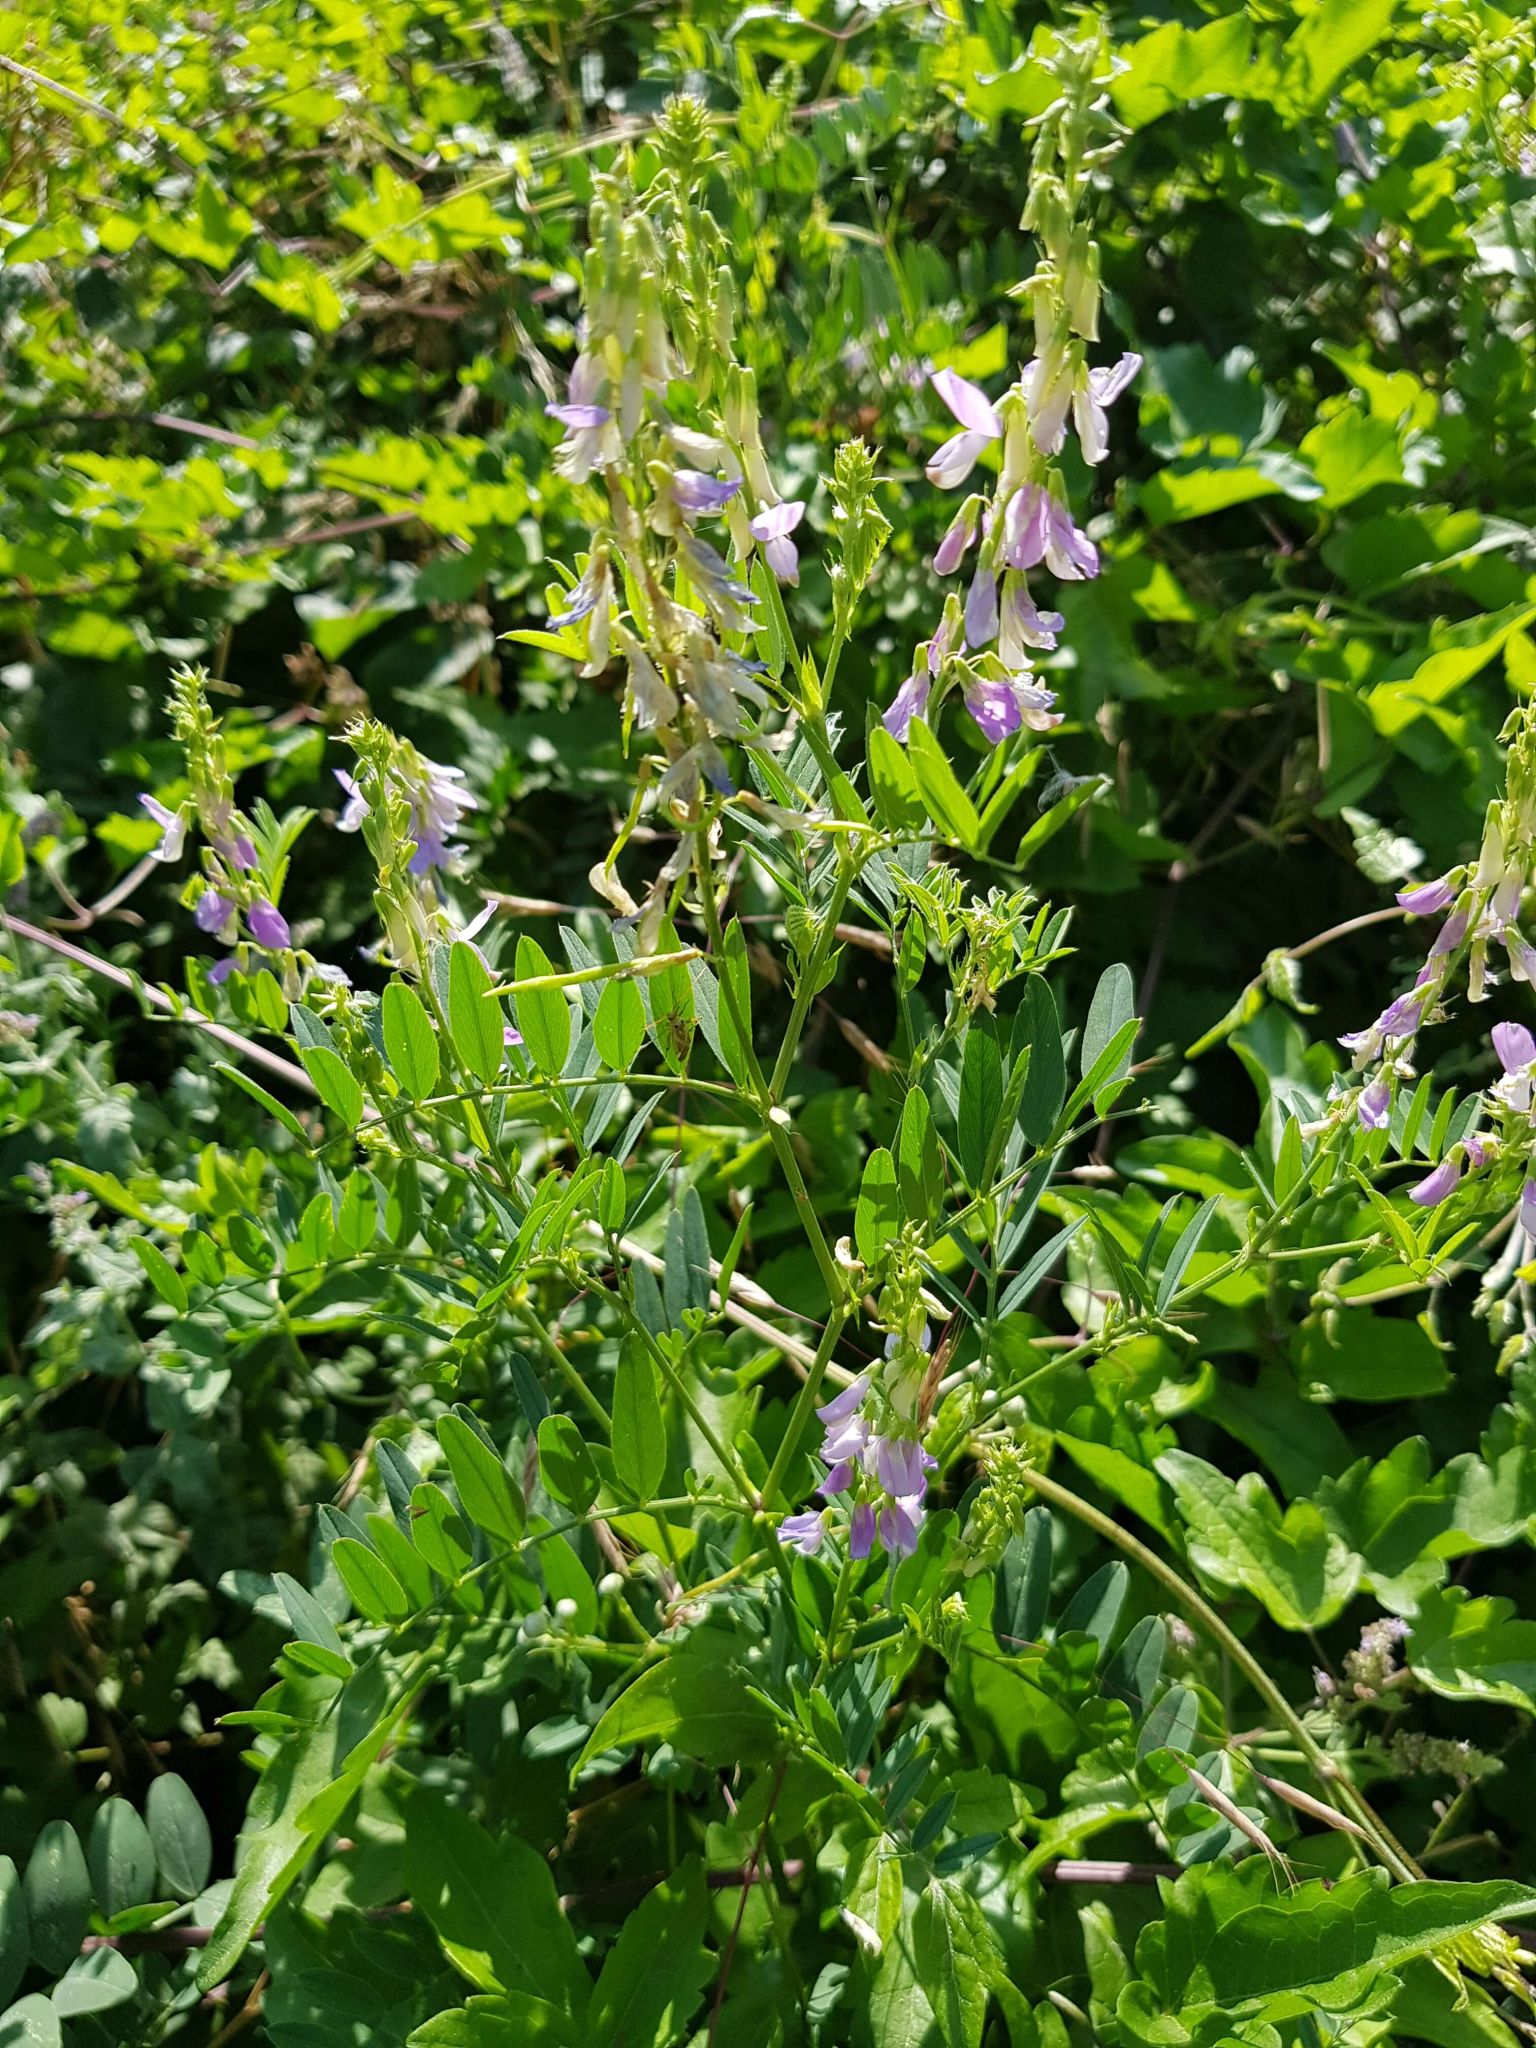
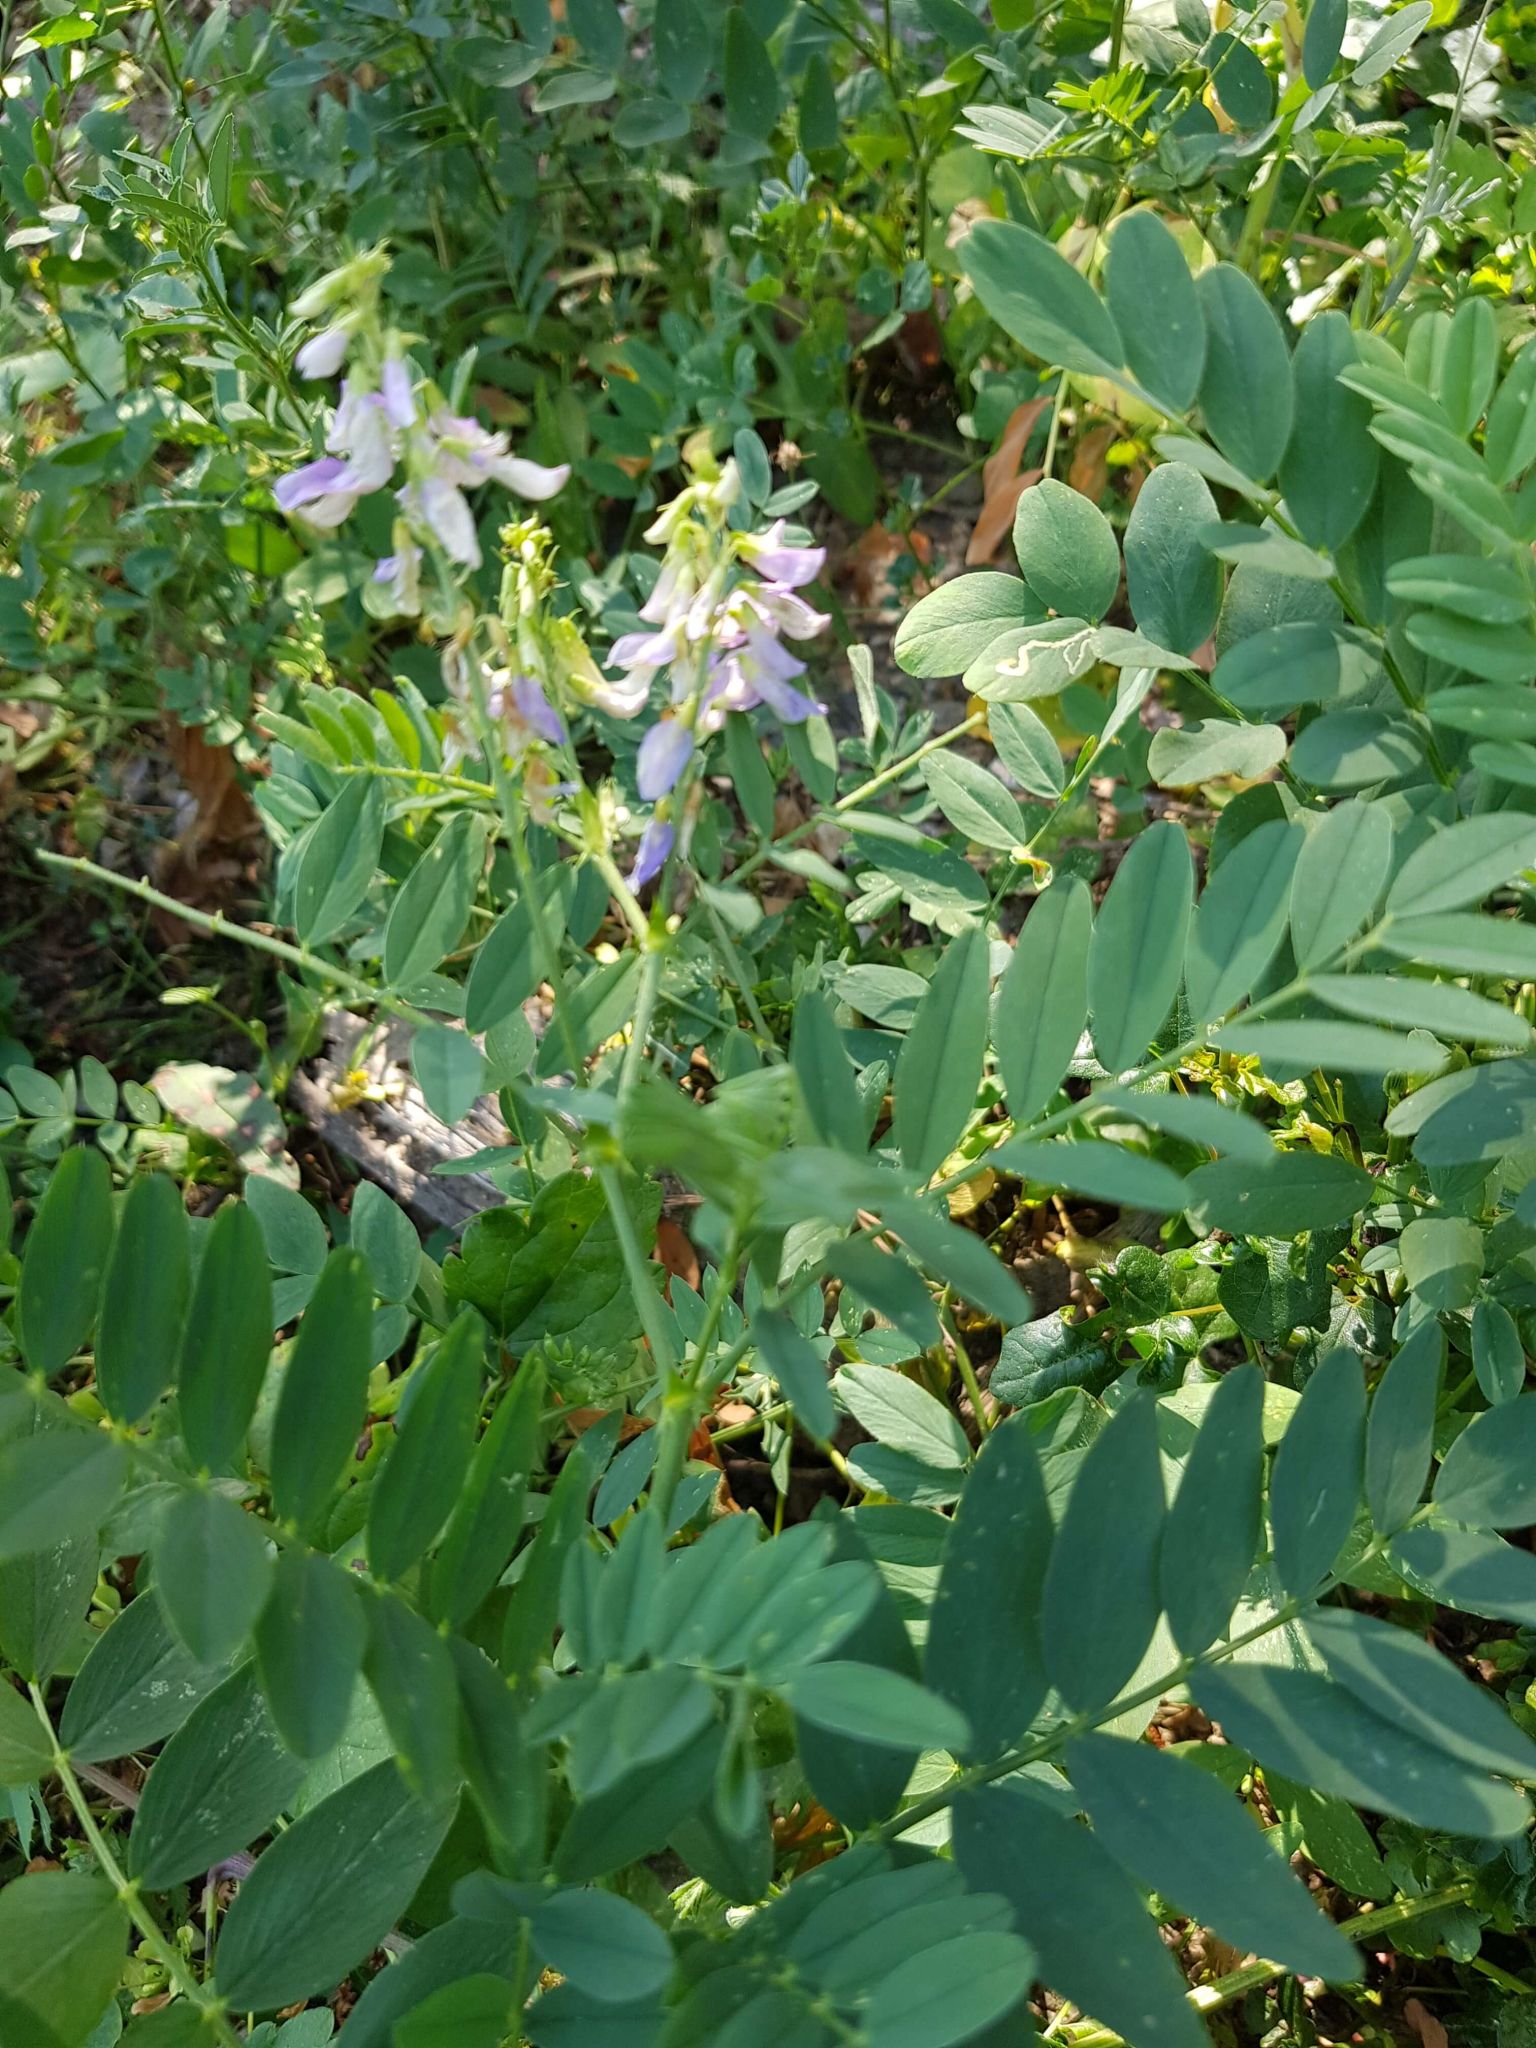
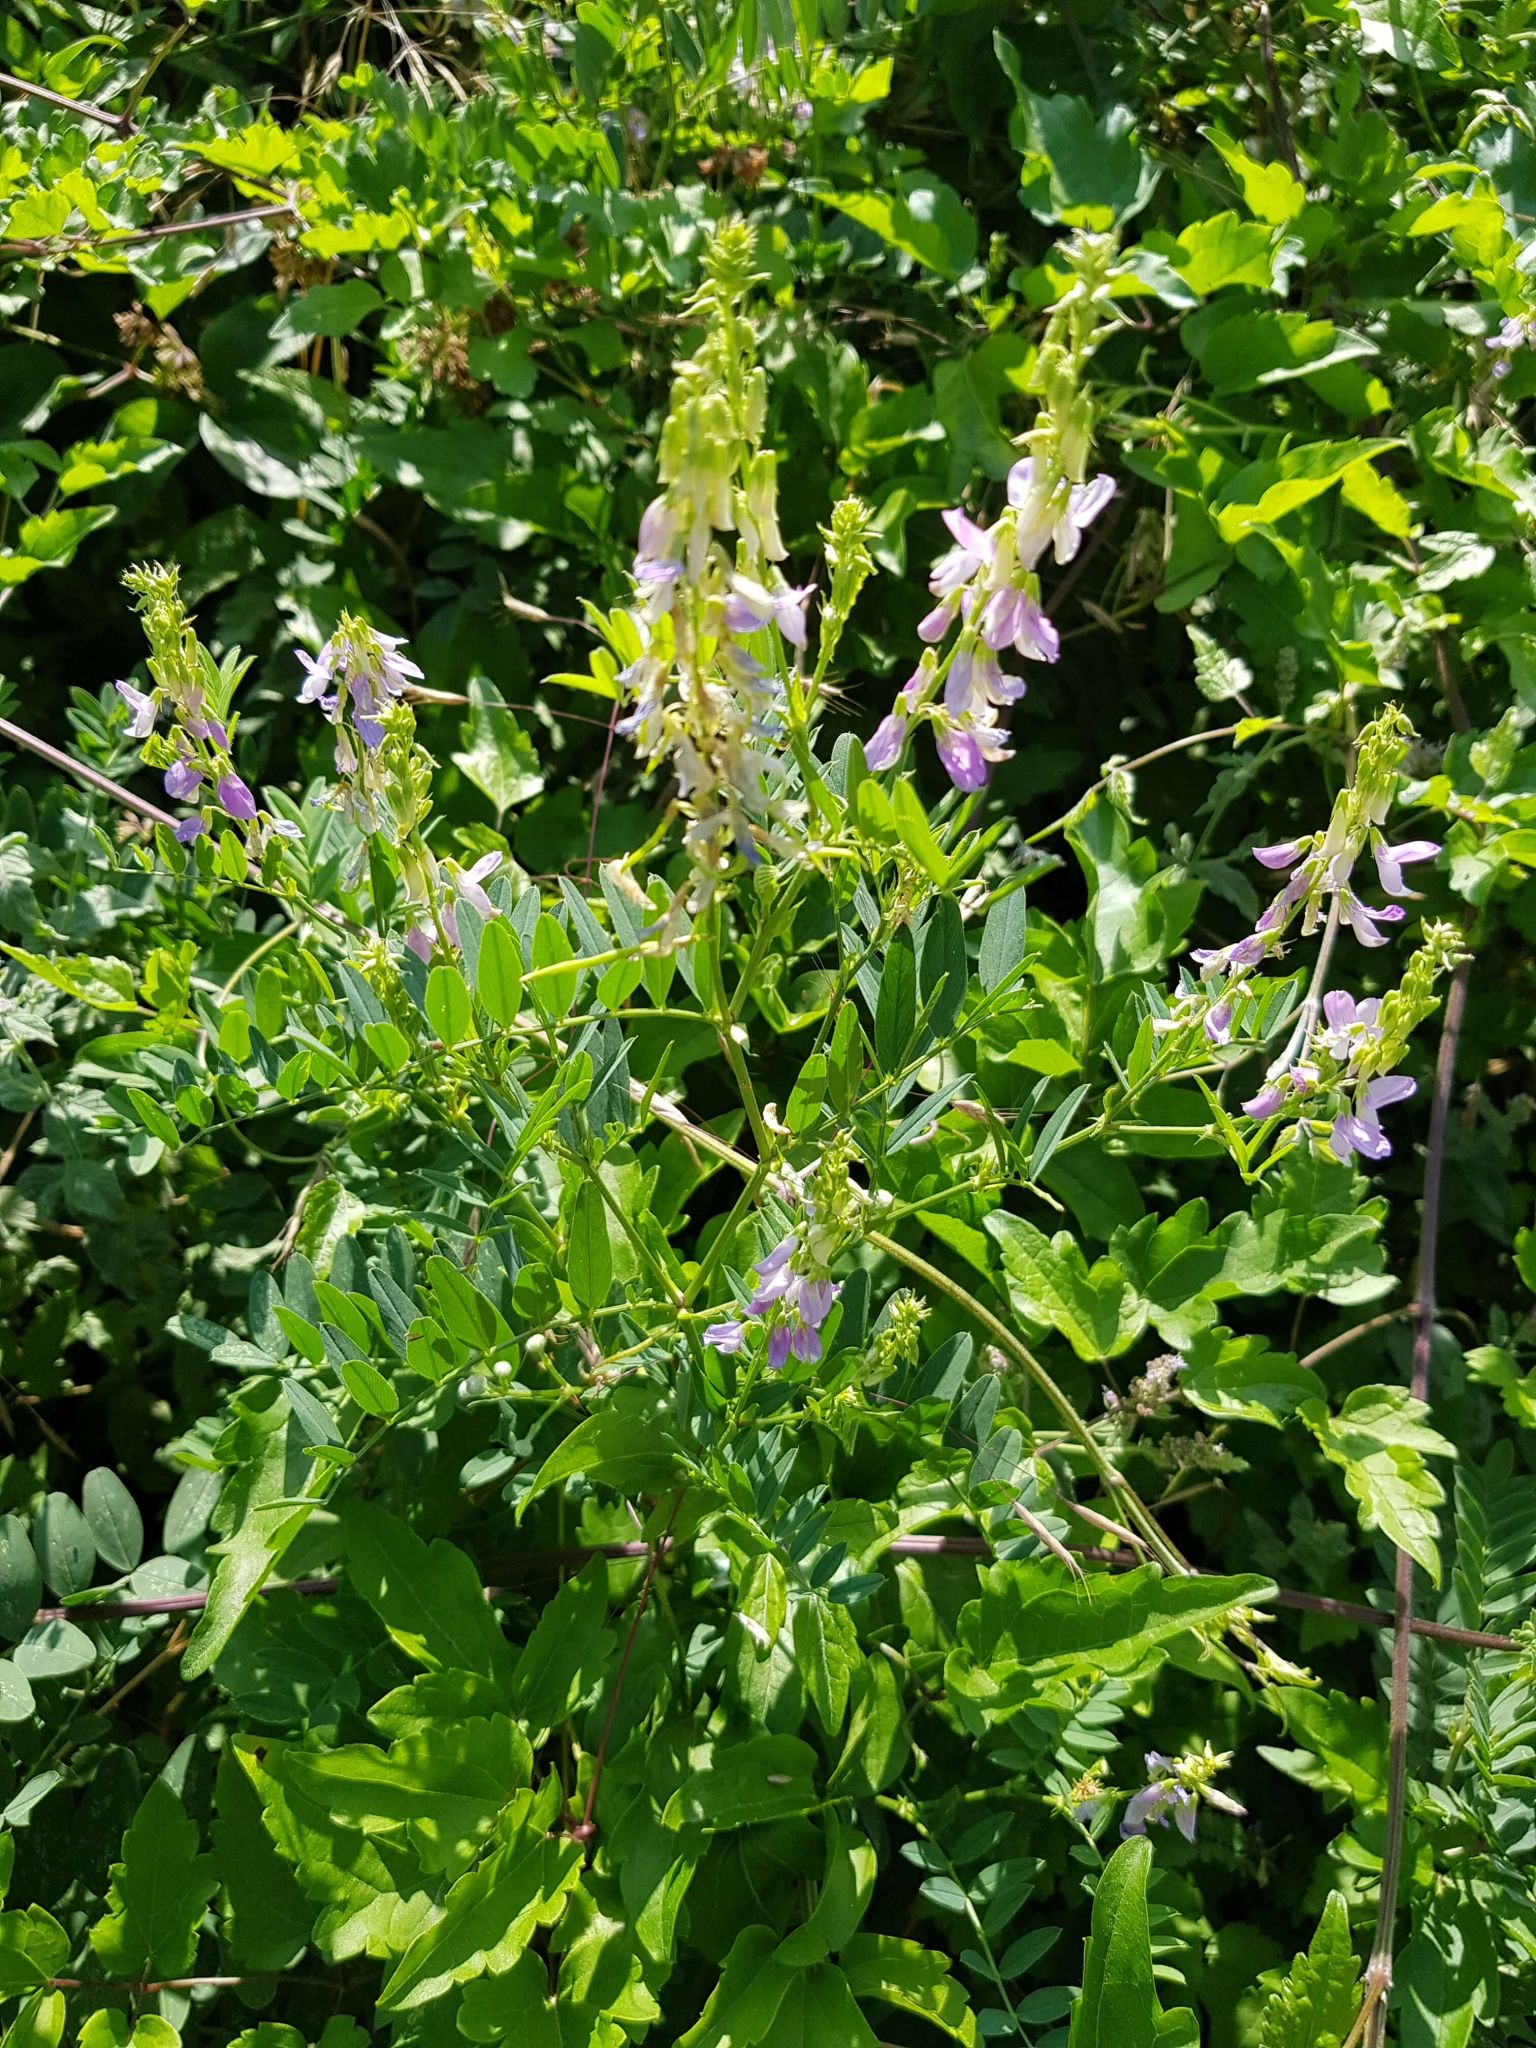
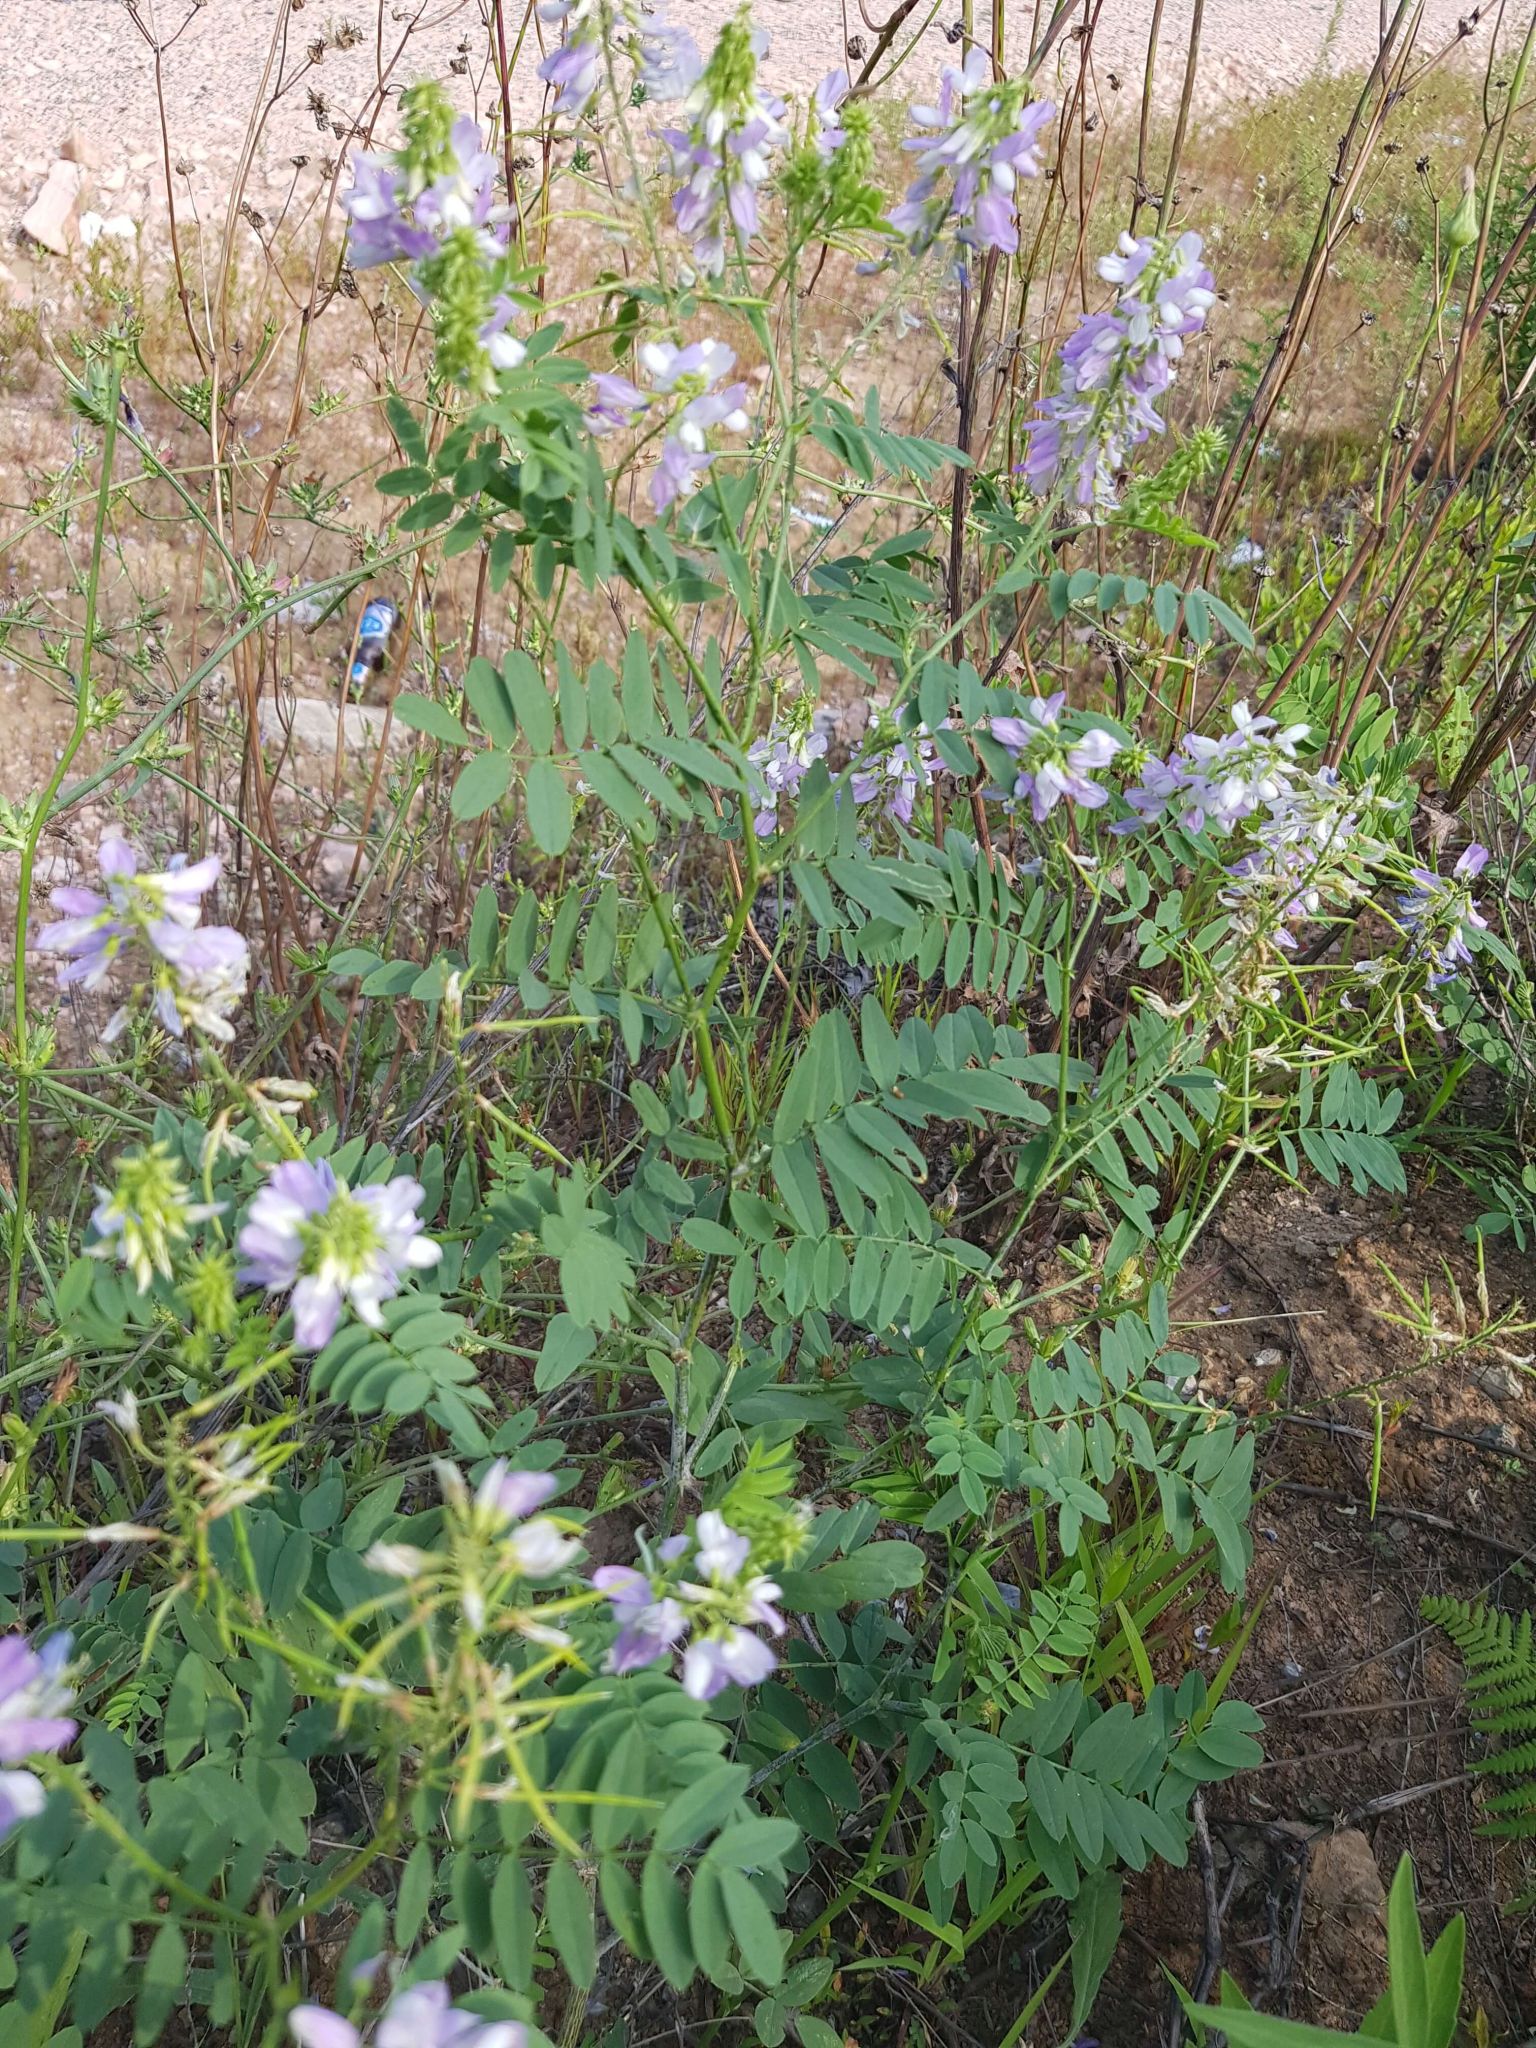
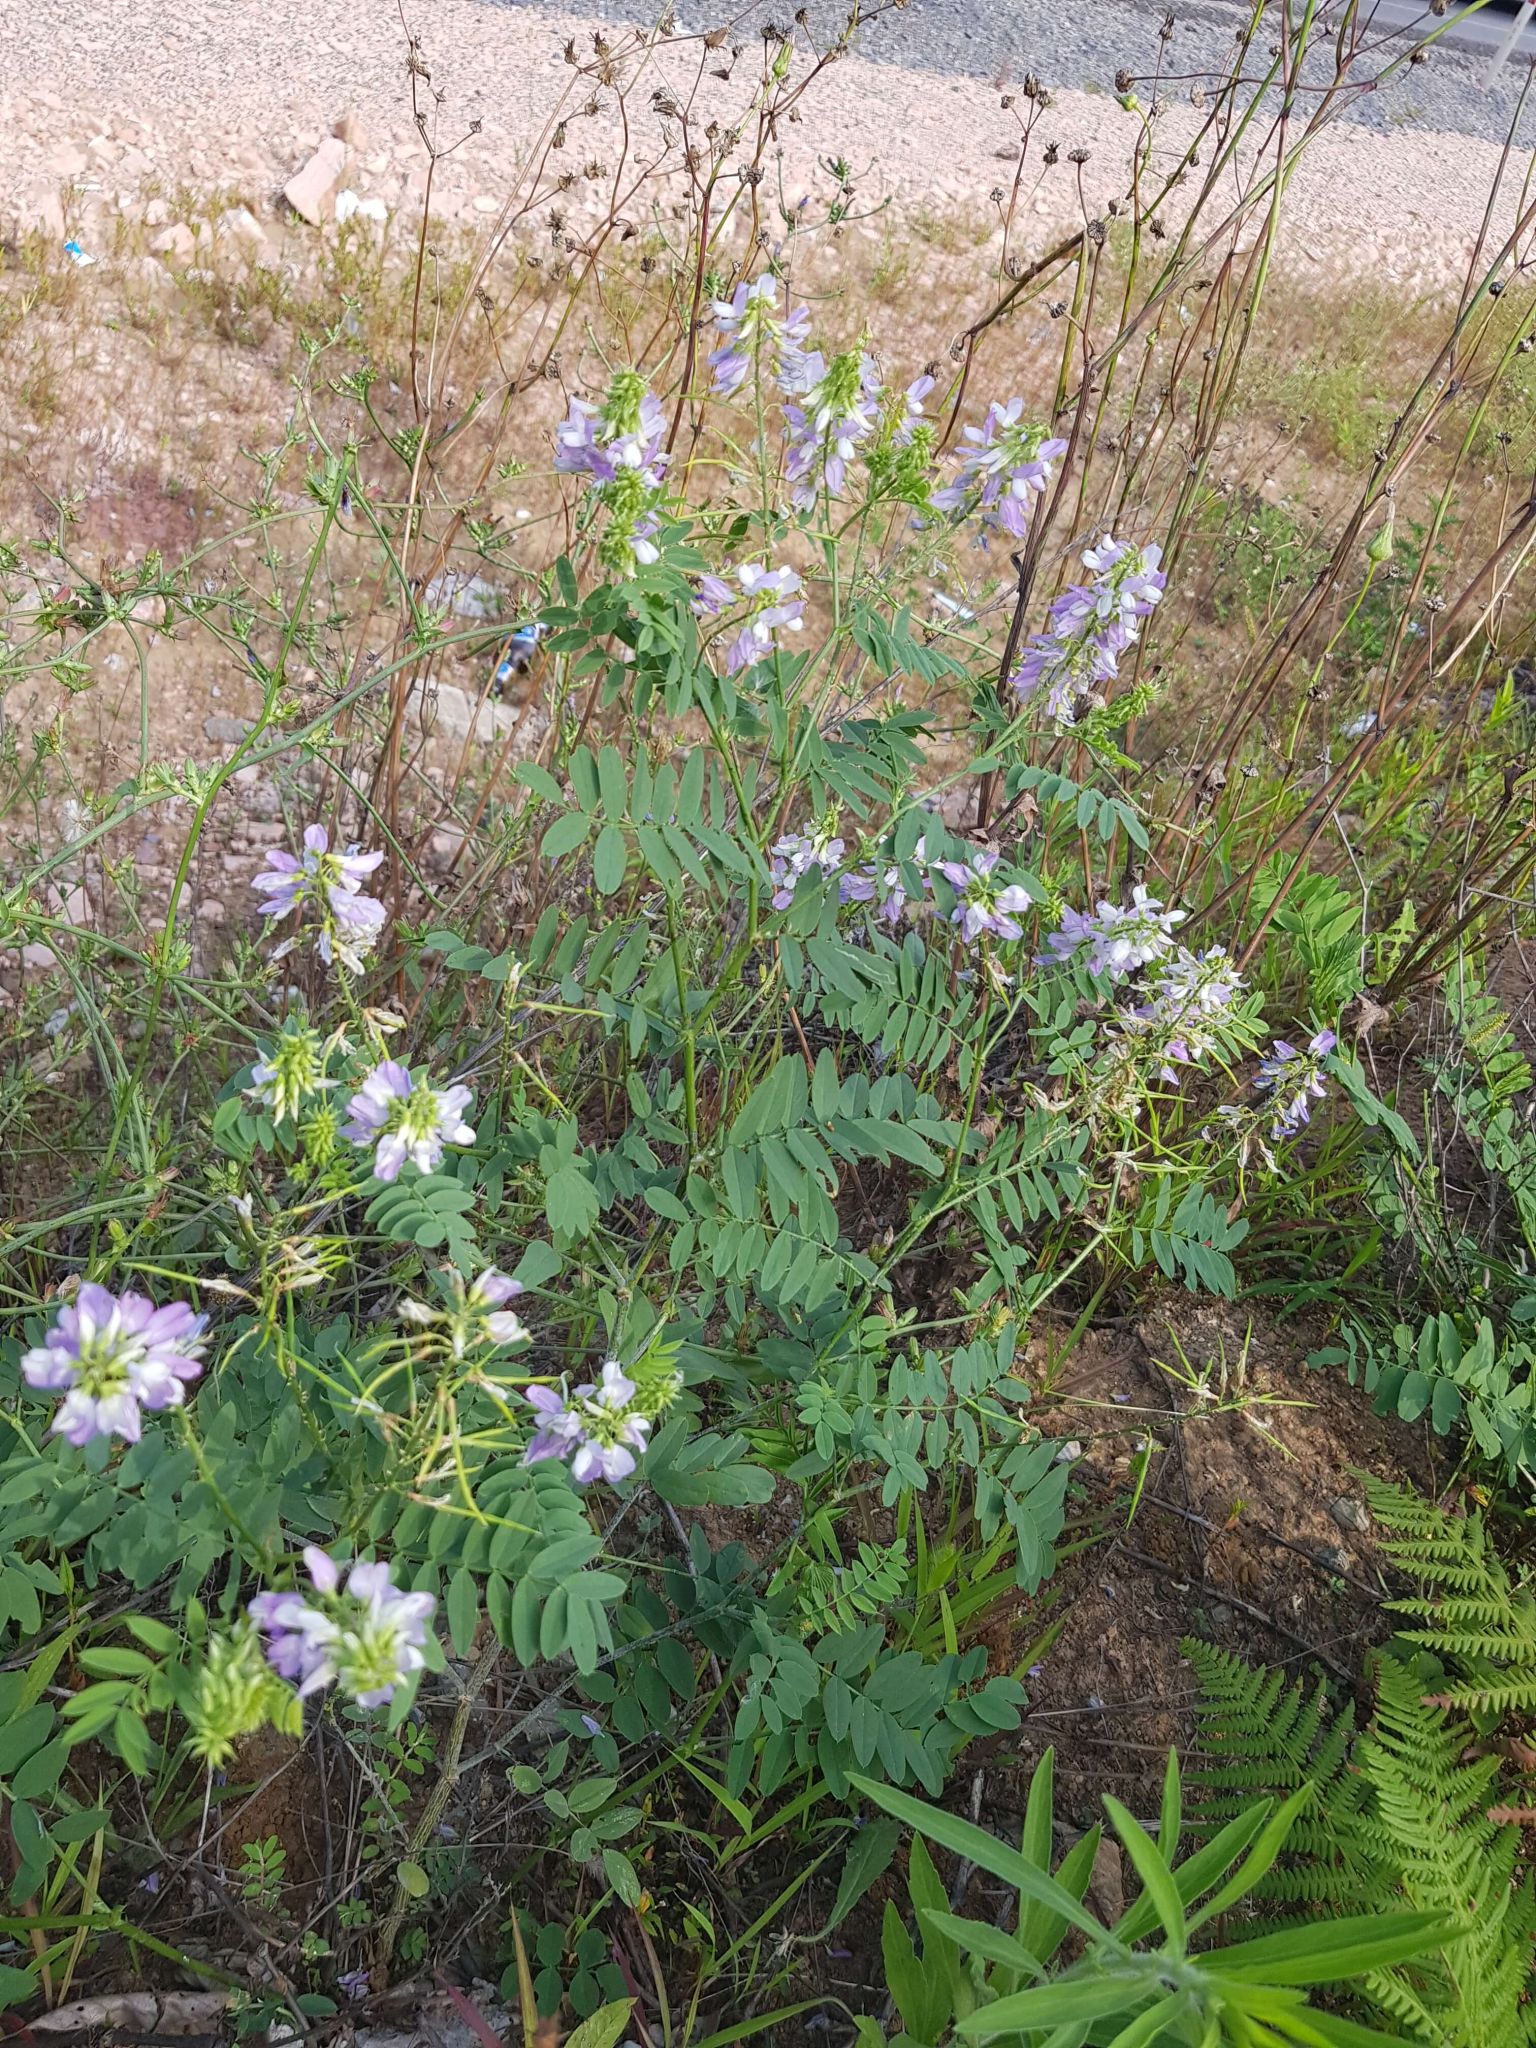
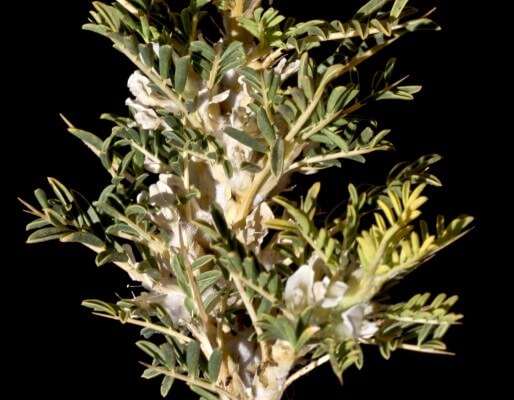
Geven, Çin Geveni, Astragalus membranaceus

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Geven, Çin Geveni, Astragalus membranaceus

    Tıbbi Kullanımı ve Faydaları:
    İmmün sistemini takviye eder. Kanser tedavisinde kemoterapinin vücuda verdiği hasar dolayısıyla zayıf düşerek enfeksiyonlara açık bir hale gelen vücudu immün sistemini takviye ederek korur. Bağışıklık sisteminin anahtar beyaz hücrelerinden biri olan T hücrelerini teşvik eder. Yine viral hücumlara karşı koyan interferon proteininin üretimini de teşvik eder. Örneğin GEVEN KÖKÜ alanlar grip, nezle ve soğuk algınlığına daha az yakalanırlar. Akut solunum yolu enfeksiyonlarında destekleyicidir. Çin'de kardiyovasküler hastalıkların tedavisinde kullanılmaktadır. Tansiyonu düşürür ve kalbe giden kan akışını iyileştirerek kalp krizlerini önlemede yardımcı olur. Vücudun fazla su ağırlığından kurtulmasına yardımcı olarak tansiyonun düşmesine yardım eder.

    Tıbbi Bakış Tarzı:
    Anti-toksikliği: Enzimler: Asetilkolin'i bozan ASETİL KOLİN ESTER ENZİMİNİ engeller ve böylece Beyni korur.
    Hormonlar: İmmün sistemini baskılayan kortizona karşı koyar.
    Lipid'ler: Thromboxane A2 nin üretimini engeller.
    Farmostatik ilaçlar: GEVEN'İN içeriğindeki swainsonine maddesi dolayısıyla kematropi tedavisinde cytotoxic ilaçların toksik etkisini azaltır.
    Deri: Deri yaralarını iyileştirdiğine dair folklorik bilgiler ve anektodal raporlar vardır.
    Dışkılama sistemi: Bağırsakları çalıştırır ve atım oranını arttırır.
    İmmün sistem: Astragalan B içeriği dolayısıyla shigella dysenteriae, staphylococcus aureus, streptococcus pneumoniae gibi bir çok zararlı bakteriye karşı engelleme görevi yapar. Baskı altındaki immün sistemini astragalan B içeriği dolayısıyla uyararak aktivasyonunun yeniden toparlanmasını sağlar.
    • Kanser tedavisi sırasında kullanılan kemoterapi ilaçlarının toksik etkisini azaltarak kanser hastalarının yaşam sürelerini arttırır.
    • Interleukin-2'nin kanserli hücreleri öldürme kabiliyetini arttırır.
    • Karaciğer kanserinin etkin bir şekilde iyileştirilmelerine yardım eder.
    • Astragalan B bir çok virüsü, onların dış hücre zarlarındaki kolestrole yapışarak müdafa güçlerini zayıflatarak immün sistemin onları kolayca yenmesine yardımcı olur. Aynı şekilde AIDSde HIVvirüsününde zaafa uğratılabileceği söylenmektedir.
    • Klasik soğuk algınlığına sebep olan virüs enfeksiyonlarına karşı vücudu korur. İyileşme zamanını kısaltır ve tekrarlama ihtimalini de azaltır.
    • Kalp hücrelerini enfekte eden coxsackie B virüsünü engellemeye yardımcı olur.
    • Gribi önlemeye yardımcıdır.
    • Beyaz kan hücrelerinin üretimini ve fonksiyonlarını arttırır.
    • Vücudun lymphocyte'ler ve B-lymphocyte'leri üretimlerini uyarır.
    • Vücudun helper-T hücrelerinin aktivitesini arttırır.
    • NK lymphocyte'lerinin fonksiyonlarını geliştirir.
    • Bir çok kanser hastasında görülen makrofaj'ların baskılanmasını engeller ve aktivasyonlarını arttırır.
    • Fagositlerin aktivitelerini geliştirir.
    • Kalp-damar sistemi: İçeriğindeki astragaloside-4 sayesinde kalp yetmezliği olan hastaların durumlarının iyileşmesine yardımcı olur. Yine ischemickalp rahatsızlığı ve angina hastaları ile kalp krizlerinde iyileşmede yardımcı olur.
    • Metabolizma: Antioksidan özellikleri iyileştirir; Hidroksil ve süperoksit serbest radikallerini temizler.
    • Atletik performansı geliştirir.
    • Bazal metabolik hızı arttırır.
    • Kronik yorgunluk sendromunu iyileştirir. Vücud enerjisi üretimini arttırır. Kronik hepatit hastalarında interferon üretimini arttırarak ve glutamate pyruvate transaminase enzimini normalleştirerek iyileşmelerinde yardımcı olur.
    • Gevenotu yalnız başına veya diğer bitkisel formüllere katılarak kronik hepatit-B nin toksik etkilerinden karaciğeri korur.
    • Yine karaciğerin fonksiyonlarını geliştirdiğinden ve anti-viral özelliklerinden dolayı hepatit-C nin iyileştirilmesinde yararlıdır.
    • Geven otu, karaciğeri bir çok toksinin hasar verici etkisine karşı korur.
    • Vücudun dayanıklılığını arttırır.
    Sindirim sistemi: Sindirim sisteminin sağlıklı bir şekilde çalışmasına katkı sağlar.
    Sinir sistemi: Adrenal bezlerinin fonksiyonunu geliştirir.
    Hayvanlar üzerinde yapılan çalışmalarda öğrenme kabiliyetini geliştirdiği görülmüştür.
    • Acetylcholine'i bozan acetylcholinesterase enzimini engelleyerek hafızayı geliştirir
    • Hayvanlar üzerinde yapılan çalışmalarda uyku kalitesini geliştirdiği görülmüştür.
    • Gevenotu vücudun stresi tolere etme kabiliyetini arttırır.

    Solunum sistemi: Folklorik bilgilere göre kronik akciğer zayıflığındaakciğerleri kuvvetlendirir.

    Etkileşimleri:
    Destekledikleri: Cytokine'ler:
    • Çeşitli antibody'lerin optimum miktarda üretilmeleri için uyarma görevi yapar.Bunlar IgA - IgE - IgG - IgM
    • İnterferonlarınvücutta üretimlerini (interferon alfa ve interferon gamma) teşvik eder.
    • Interleukin 2 nin anti-tümör aktivitesini geliştirir.
    • Interleukin 6nın üretimini arttırır.
    • Tumor necrosis faktör üretimini arttırır.

    Nörotransmitterler: Asetil kolininfonksiyonunu geliştirir.
    Farmostatik ilaçlar: Kemoterapide kullanılan anti-kanser ilaçların toksik etkinliklerini (kemik iliğine baskı, karaciğere hasar verme, mide bulantısı gibi) azaltır.İmmün sisteme baskı yapan siklofosfamit'e karşı etki yapar.Interleukin 2nin kanser hücreleri ile kombine olma potansiyelini arttırır.

    İkincil mesajcılar: Plazmacyclic AMP seviyelerini arttırır.

    İçeriği:
    Vitaminler: Choline
    Mineraller: Krom - Demir - Bakır - Mağnezyum - Mangan - Çinko - Molibden - Ribidyum
    Kimyasallar: Alkoloidler: Swainsonine*- Betaine
    Karbonhidratlar: Sucrose - Glucuronic Asit;(Polisakkaritler): Astragalan B
    Lipidler: (Triterpen glükositler): Astragaloside I - Astragaloside II - Astragaloside III - Astragaloside IV Astragaloside IV - Astragaloside V - Astragaloside VI - Astragaloside VII
    Phytosterol'ler: Beta-Sitosterol
    Organik asitler: Glucuronic Asit
    Polifenoller: (izoflavonoidler): 4'Hydroxy-3'-methoxyisoflavone 7-sug
    Diğer: Dimethoxyisoflane - Kumatakenin
    *Sadece astragalus oxyphysus da bulunur.
    .................................................. ..................

    Kronik böbrek hastalığının tedavisi için Astragalus (geleneksel bir Çin tıbbı)

    Hong Wei Zhang1, Zhi Xiu Lin , Chuanshan Xu , Connie Leung , Lai Sum Chan DOI: 10.1002/14651858.CD008369.pub2Soyut

    Arka plan: Astragalus (Radix Astragali, huang qi), Astragalus membranaceus (Fisch.) Bge'nin kurutulmuş köküdür. var. mongholicus (Bge.) Hsiao veya Astragalus membranaceus (Fisch.) Bge. (Aile Baklagiller). Geleneksel Çin tıbbında böbrek hastalıklarını tedavi etmek için en yaygın kullanılan bitkilerden biridir. Klinisyenlerin ve hastaların kronik böbrek hastalığını (KBH) yönetmek için kullanımı hakkında karar vermelerine yardımcı olmak için kanıtlara ihtiyaç vardır.

    Amaç: Bu derleme, KBH'li kişilerin tedavisi için Astragalus'un yararlarını ve potansiyel zararlarını değerlendirdi.

    Arama yöntemleri: Bu incelemeyle ilgili arama terimlerini kullanarak Denemeler Arama Koordinatörü ile iletişim kurarak Cochrane Renal Group'un 10 Temmuz 2014'e kadar Uzman Kaydı'nı aradık. Ayrıca CINAHL, AMED, Current Controlled Trials, OpenSIGLE ve CBM, CMCC, TCMLARS, Chinese Dissertation Database, CMAC ve Index to Chinese Periyodik Literatür dahil Çince veri tabanlarını da araştırdık.

    Seçim kriterleri: Astragalus'u tek başına ham bitki veya ekstrakt olarak plasebo ile, tedavi olmadan veya geleneksel müdahalelerle karşılaştıran randomize kontrollü çalışmalar (RKÇ'ler) ve yarı RCT'ler dahil edilmeye uygundu.

    Veri toplama ve analiz: İki yazar bağımsız olarak verileri çıkardı ve dahil edilen çalışmalarda kayırma hatası riskini değerlendirdi. Meta-analizler, %95 güven aralığı (CI) ile, ikili sonuçlar için bağıl risk (RR) ve sürekli sonuçlar için ortalama farklılıklar (MD) kullanılarak yapıldı.

    Ana sonuçlar: 241'i diyaliz tedavisi alan 1323 katılımcıyı içeren 22 çalışmayı dahil ettik. Altı çalışmada kayırma hatası riski yüksek ve kalan 16 çalışmada belirsiz olarak değerlendirildi. Çalışma kalitesi genel olarak düşüktü. Bizim aday gösterdiğimiz renal replasman tedavisi (RRT) veya diyalize başlama gereksinimine kadar geçen süre ve tüm nedenlere bağlı ölüm, dahil edilen çalışmaların hiçbirinde rapor edilmedi. Astragalus'un böbrek fonksiyonu üzerindeki etkilerine ilişkin sonuçlar, tutarsız. Astragalus, tedavinin sonunda CrCl'yi önemli ölçüde artırdı (4 çalışma, 306 katılımcı: MD 5,75 mL/dk, %95 GA 3,16 ila 8,34; I² = %0), SCr'de azalma (13 çalışma, 775 katılımcı: MD -21,39 µmol/L, %95 CI -34,78 ila -8; I² = %70) ve özellikle başlangıç ​​SCr'si < 133 µmol/L olanlarda (3 çalışma, 187 katılımcı: MD -2. 52 umol/1, %95 CI -8.47 ila 3.42; I² = %0). Astragalus, tedavinin sonunda 24 saatlik proteinüriyi önemli ölçüde azalttı (10 çalışma, 640 katılımcı; MD -0.53 g/24 saat, %95 GA -0.79 ila -0.26; I² = %90); genel olarak önemli ölçüde artan hemoglobin seviyeleri (4 çalışma, 222 katılımcı): MD 9,51 g/L, %95 GA 4,90 ila 14,11; I² = %0) ve özellikle hemodiyaliz hastalarında (3 çalışma, 142 katılımcı: MD 11,20 g/L, %95 GA 5,81 ila 16,59; I² = %0). Astragalus, serum albümini önemli ölçüde artırdı (9 çalışma, 522 katılımcı: MD 3.55 g/L, %95 CI 2.33 ila 4.78; I² = %65). Bu anlamlı artış her iki diyalizde de görüldü (3 çalışma, 152 katılımcı): MD 4.04 g/L, %95 CI 1.91 ila 6.16; I² = %72) ve diyaliz olmayan hastalar (6 çalışma, 370 katılımcı: MD 3,24 g/L, %95 GA 1,70 ila 4,77; I² = %61). Astragalus sistolik kan basıncını (2 çalışma, 77 katılımcı: MD -16,65 mm Hg, %95 GA -28,83 ila -4,47; I² = %50) ve diyastolik kan basıncını (2 çalışma, 77 katılımcı: MD -6,02 mm Hg) önemli ölçüde azalttı , %95 GA -10.59 ila -1.46; I² = %0) Dahil edilen 22 çalışmanın altısı hiçbir yan etki gözlemlenmediğini bildirdi; kalan 16 çalışma ise yan etki bildirmedi.

    Yazarların vardığı sonuçlar: Konvansiyonel tedavilere yardımcı bir tedavi olarak Astragalus'un proteinüriyi azaltmada ve hemoglobin ve serum albümini artırmada bazı umut verici etkiler sunduğu bulunsa da, yetersiz metodolojik kalite ve yetersiz raporlama, mevcut kanıtlara dayanarak kesin sonuçlara varılamayacağı anlamına geliyordu.
    Nuran Serinkaya
    Hayırlı akşamlar hocam ben GEVEN SETİ kullanıyorum BAĞIŞIKLIK SİSTEMİNİ GÜÇLENDİRİYOR ve ENERJİ VERİYOR o kadar enerji veriyor ki aklın hayalin şaşar. Sabah saat 8 de sporuma gidiyorum 10.000 adım attım sonra egzersiz yapılan yere gittim egzersizimi de yaptım önceden sadece yürürdüm egzersiz yapmazdım ama GEVEN ürünün verdiği ENERJİ SAYESİNDE SONUNDA EGZERSİZ YAPMAYA BAŞLADIM. Pilatese gitmeyi düşünüyorum GEVEN sayesinde BÜTÜN HÜCRELER YENİLENİYOR hocam akşam birçok işimi yapıyorum hocam çok teşekkürler Allah'ım yolunuzu açık etsin. Hocam tam düzenli kullanacağım geveni inşallah çok sağ ol çok teşekkürler ellerinize emeklerinize sağlık hocam.
    KAYNAK

    Nuran Serinkaya
    GEVEN SETİ sayesinde EGZERSİZ YAPMAYA BAŞLADIM hocam hatta pilatesi bile düşünüyorum hocam Allah'ım binlerde kez razı olsun.
    KAYNAK

    Fatma Fatma Ezgi
    Ben de GEVEN SETİNİ yeni başladım kullanmaya. Ramazan ayının 2. gününden beri kullanıyorum DİNÇLİK VERİYOR.
    KAYNAK

    Mer Yem
    Arkadaşlar GEVEN SETİNDEN söz etmek istiyordum. Şuanda kullanıyorum KENDİMİ ÇOK SAĞLIKLI YENİLENMİŞ HİSSEDİYORUM.
    KAYNAK

    Yasir Dursin‎
    İbrahim hocamdan hangi ürünü kullandıysam çok faydalarını gördüm şu sıralara GEVEN KAPSÜLÜ ve ORMUS GLD kullanıyorum SAÇIMIN GÜRLEŞTİĞİNİ, DERİLERİMİN GÜZELLEŞTİĞİNİ, DAHA ENERJİK, POZİTİF OLDUĞUMU HİSSEDİYORUM teşekkürler Gökçek ailesi.
    KAYNAK

    Mer Yem
    Hocam GEVEN KAPSÜL kullanıyorum ve ZENCE MAY kullanıyorum KENDİMİ ÇOK SAĞLIKLI HİSSEDİYORUM. Evet ellerinize sağlık hiçbir ürününüzün eşi benzeri yok hepsi süper.
    KAYNAK

    Hacı Turk‎
    Ben Gökçek ürünlerini 4-5 senedir kullanıyorum. Ben deli değilim, paramı yolda bulmadım. İbrahim Gökçek'i de tanımam akrabalığım da yok. Şimdi söyleyeceklerim yanlış anlaşılmasın diye öncen söyleyeyim dedim.

    KALBİM AĞRIYORDU, 5-6 ay ALIÇ KAPSÜL ve GÖKÇEK ZENCE MAY kullandım geçti AĞRI KALMADI.

    Geçmek bilmeyen UÇUKLARIM VARDI, ağzımın etrafında çok tehlikeli bir virüsmüş. 4-5 ay MELİSA KAPSÜL kullandım o da geçti çok şükür.

    Agresif DİŞ ETİ ÇEKİLMESİ vardı Türkiye'de gittiğim peridontolog kalmadı hepsi antibiyotik, başka bir şey yapmadılar. O da beni daha hasta ediyordu diş düzelse de çare yine Gökçek ürünü. ORMUS GMS ile bir yemek kaşığı ağızımda 1-2 dk beklettim geri tükürdüm ve inanılmaz. DİŞ ETİ ÇEKİLMESİ DÜZELDİ.

    Kafamda YAĞ BEZESİ vardı. ZERDEÇAL KAPSÜL ve ZENCE MAY ile YARI YARIYA KÜÇÜLDÜ. 3 Ayda fakat peyniri bırakmadığımdan tedavi yarım kaldı peynir gerçekten yemek doğru değil. Yemez de ürünlere devam etsem hepten eriyecek onu bir ara yapacağım.

    GEVEN JEL ürününü kullanın CİLDİNİZİ İPEK GİBİ YAPIYOR bunu bayanlar için söylüyorum.

    ORMUS GMS antibiyotik KULLANMADAN BOĞAZ AĞRISI, ÖKSÜRÜK için ÇOK ETKİLİ defalarca denedim.

    LİTYUM OROTAT ve SARI KANTARON ürünlerini tavsiye ederim. Gerçek ekstraktlar ile yapılıyor, içinde saman, yulaf yok. Denedim etkili, PSİKOLOJİMDE bir sorun yok. Günümüzün stresli zamanlarında sigara içmektense bir tane SARI KANTARON içiyorum işimi görüyor.

    Ben vicdanen yazmak zorunda hissettim. Videolarında da der İbrahim bey. İyi olan bizi unutuyor diye, artık mecbur hissettim parasıyla değil mi demeyin az elinizi vicdanınıza koyun.
    KAYNAK

    Nuran Serinkaya
    GEVEN KAPSÜL ürünü TAHRİBAT YERLERİNİ TAMİR EDİYOR, ENERJİ VERİYOR benim kolum bir yere deyse simsiyah oluyordu kolumu saklıyordum. Sanki birisi vurmuş gibiydi ama şimdi eser yok artık derideki tabakaları kalınlaştırıyor, deriyi tamir ediyor, tüm hücreleri tamir ediyor GEVEN KAPSÜL ürünün kıymetini bilelim müthiş bir şey çok teşekkürler hocam ben asla GEVEN KAPSÜL olmadan yapamam.
    KAYNAK

    Nuran Serinkaya
    Çok değerli hocam sizler halkınız için ne kadar değerli bitkiler çıkarıyorsunuz. Ellerinize, emeklerinize sağlık GEVEN KAPSÜL ürününün kıymetini kullananlar bilir hocam bana kırkbinkere maşallah ben çıldırdım spor yapıyorum hocam bu tarihe geçecek bir şey GEVEN KAPSÜLÜ anlamama GEVEN KAPSÜL ürününün kıymetini kullanan bilir. Her HÜCRELERİ TAMİR EDİYOR hocam DERİLERDEKİ TABAKADA KALINLAŞMA OLUYOR. CİLDİ bile GÜZELLEŞTİRİYOR bütün tahribat yerlerini tamir ediyor hocam Allah binlerce razı olsun çok teşekkürler sizlere.
    KAYNAK

    Nuran Serinkaya
    Hayırlı günler hocam ben GEVEN KAPSÜL ile devam edeceğim inanılmazmış ben GEVEN KAPSÜL bunu gördüm bu başka bir şeymiş DEVAMLI AKTİF HAREKET DOLU GÜNLER YAŞATIYOR.
    KAYNAK

    Nuran Serinkaya
    GEVEN SETİ sayesinde EGZERSİZ YAPMAYA BAŞLADIM hocam hatta pilatesi bile düşünüyorum hocam Allah'ım binlerde kez razı olsun.
    KAYNAK

    Nuran Serinkaya
    Hayırlı akşamlar hocam ben GEVEN SETİ kullanıyorum BAĞIŞIKLIK SİSTEMİNİ GÜÇLENDİRİYOR ve ENERJİ VERİYOR o kadar enerji veriyor ki aklın hayalin şaşar. Sabah saat 8 de sporuma gidiyorum 10.000 adım attım sonra egzersiz yapılan yere gittim egzersizimi de yaptım önceden sadece yürürdüm egzersiz yapmazdım ama GEVEN ürünün verdiği ENERJİ SAYESİNDE SONUNDA EGZERSİZ YAPMAYA BAŞLADIM. Pilatese gitmeyi düşünüyorum GEVEN sayesinde BÜTÜN HÜCRELER YENİLENİYOR hocam akşam birçok işimi yapıyorum hocam çok teşekkürler Allah'ım yolunuzu açık etsin. Hocam tam düzenli kullanacağım geveni inşallah çok sağ ol çok teşekkürler ellerinize emeklerinize sağlık hocam.
    KAYNAK

    Ftma Ftma
    Merhaba İbrahim Gökçek'i takip eden ve ürünlerini kullanan arkadaşlar. GEVEN KAPSÜLÜ içtim inanılmaz bi ürün GENÇLİK İKSİRİ. Kaşlarımın arasında YAŞLILIK ÇİZGİLERİ vardı Ramazan Ayında kullandım ÇİZGİLER YAVAŞ YAVAŞ KAYBOLDU, inanamadım ve bir kapsül bitirmeme rağmen SÜPER ENERJİ DE VERİYOR ve burada yazamayacağım ÖZEL HORMONAL ŞEYLER DE oldu 1 kutuyla böyle etki etti çok şaşkınım. Gökçek ürünleri HEM ŞİFALI HEM KALİTELİ HEM DE YAN ETKİSİZ. Ekim'in 18'inde bir sene olacak birçok ürünleri kullandım ÜRTİKERİM VAR ne hikmetse Gökçek'in hangi ürününü kullanırsam kullanayım HİÇ KAŞINTIM OLMUYOR. Şuan Ormus GLD ve SARI KANTARON KAPSÜL içiyorum Allah razı olsun İbrahim Gökçek'ten.
    KAYNAK

    Fatih Çınarlar
    İbrahim gökçek hocamdan GEVEN JEL aldım cildimdeki hafif kizarikliklar için ilk kullanımda cildimin rengi açıldı KIZARIKLIKLAR İYİCE AZALDI.
    KAYNAK

    Kayrs Neslisah
    Cildime çok iyi geldi çok teşekkür ederim hocam (GEVEN JEL)
    KAYNAK

    Serkan Kansoy
    GEVEN JEL aldım MUHTEŞEM BİRŞEY ya YÜZÜM PARLIYOR, KIRIŞIKLARIMI HEMEN GİDERDİ inanamadim İKİ GÜNDE BU KADAR ETKİ GÖSTERİNCE İNANAMIYORUM HALEN mutluyum bu üründen gerçekten muhteşem urunmus
    KAYNAK

    Mir AK
    GEVEN JEL İNANILMAZ BİR ÜRÜN kesinlikle herkese tavsiye ederim, BİR GÜN İÇİNDE SİVİLCELER SÖNDÜ ve RENGİM AÇILDI
    KAYNAK

    Mustafa AY‎
    Hocam öcelikle kolay gelsin. AYAĞIMA KAYNAR SU DÖKÜLDÜ ve YARA DERİ ALTINA KADAR İŞLEMİŞTİ iz kalmasından korkuyordum GEVEN JEL İLE maşallah ESER KALMADI hocam teşekkür ederim.
    KAYNAK

    sezerkutpinar
    YÜZÜM İÇİN GEVEN JEL KULLANDIM OLUMLU SONUÇ ALDIM Allah razı olsun hocam
    KAYNAK

    Fatima Çekik
    İbrahim Gökçek hocamın GEVEN KAPSÜLÜNDEN sonra bir sonraki ürünü ÜZERLİK KAPSÜL ömrümde böyle ürün görmedim üzerliği kullandığım zamanlarda HARİKA HİSSEDİYORSUNUZ bildiğiniz pamuk şekeri oluyorsunuz o kadar etkili yanında ORMUS GLD ürününü de kullandım Allah razı olsun Gökçek hocamızdan. Ürünlerin hepsi çok güzel, kaliteli ve etkili ben fayda gördüğüm için insanlara faydam dokunur diye yazma gereği duydum.
    KAYNAK

    salih.caliskan.750
    Oğlum için GEVEN KAPSÜL kullandık. 2 hafta sonra SAÇ DÖKÜLMESİNİ durdurdu. Ayrıca GEVEN JEL de kullandık. Cilde mükemmel bir etkisi var. CİLDİ PARLATIYOR, GENÇLEŞTİRİYOR. İbrahim hocama ve ekibine şükranlarımı sunuyorum.
    KAYNAK

    ozkancamur
    GEVEN KAPSÜL müthiş bir ürün gerçekten enerji veriyor. Halsizliği bitiriyor CİLDİ PARLAK, BERRAK ve PÜRÜZSÜZ HALE GETİRİYOR ayrıca saçlar içinde mükemmel bir ürün GEVEN JEL ile birlikte kullanıldığında daha da etkisi belli oluyor.
    KAYNAK

    kitap_ve_vuslat
    CAT'S CLAW ve GEVEN KAPSÜL ürünlerini KORDİSEP SETİ ile birlikte BAĞIRSAK MANTARI için 3 ay annem kullandı. Çok etkili ürünler. Annem kolunu da inciltti koluna GEVEN JEL ile OZON YAĞI sürdük çok faydası oldu. Ürünleriniz çok kaliteli ve etkili herkese tavsiye ederim.
    KAYNAK

    o.y.a777
    İbrahim beyin birçok ürününü kullandım ve istisnasız hepsinden de şifa gördüm. GEVEN SETİ ürününü saçlarım için kullanmıştım çok memnun kaldım. DÖKÜLEN SAÇLARIMIN YERİNE 3 AY DA YENİLERİ ÇIKTI. Aynı zaman KASLARIMI GÜÇLENDİRDİ. Bu tarz sorunları olanlara öneririm. İbrahim beyi çok çaresiz kaldığım bir anda 6 yıl önce tesadüfen keşfettim. Allah ondan razı olsun. Tüm tanıdıklarıma tavsiye ettim. Onlar da kullanıyorlar. Biz çok memnunuz. Teşekkür ederiz.
    KAYNAK

    terziler. selma
    GEVEN SETİ kullanıyorum ŞEKERİM DÜŞTÜ.
    KAYNAK

    Fatima Çekik
    GEVEN KAPSÜL için yazılanlar az bile resmen GENÇLİK İKSİRİ o kadar diyeyim. Böyle bir ürün görmedim dehşet harika Allah Gökçek hocamızın iki cihanda yüzünü güldürür inşallah.
    KAYNAK

    Fatima Çekik
    Hocam dün bir tanıdığım sana ne olmuş böyle GENÇLEŞMİŞSİN dedi. Ben de GEVEN KAPSÜL kullanıyorum dedim hemen bugün OZON YAĞI ile GEVEN KAPSÜL siparişi verdim Allah ilminizi arttırsın.
    KAYNAK

    Ibrahim Sarıoğlu
    GEVEN KAPSÜL kullandım CİLT GÜZELLEŞTİ, BAĞIRSAK DÜZELDİ vücudum arındı. MAKADOR kullandım enerji veriyor erken boşalma ve İLİŞKİ SÜRESİNİ UZATIYOR.
    KAYNAK

    Nuran Serinkaya
    GEVEN KAPSÜL vücudun GENÇLİK İKSİRİDİR ben kullandım YAŞLANMAYI DURDURUYOR. Keşke hiç sağlık sorunlarım olmasa da hep geven kapsül kullansaydım. Yaşlanmayı durduruyor, kan dolaşımını düzenliyor müthiş sonuçlar alınıyor çok teşekkürler hocam.
    KAYNAK

    Fatima Çekik
    Ben de GEVEN KAPSÜL ürününü KRONİK ÜRTİKER için aldım 3 ay kadar kullandım süper bir enerji veriyor. Yüzüme bir güzellik geldi, KAZAYAĞI ÇİZGİLER de azalma oldu güne bir sefer kullandım harika geven kapsülü içenler bilir İbrahim hocamızdan Allah razı olsun.
    KAYNAK

    Ibrahim Sarıoğlu
    GEVEN KAPSÜL kullandım CİLT GÜZELLEŞTİ, BAĞIRSAK DÜZELDİ vücudum arındı. MAKADOR kullandım enerji veriyor erken boşalma ve İLİŞKİ SÜRESİNİ UZATIYOR.
    KAYNAK

    Nuran Serinkaya
    GEVEN KAPSÜL vücudun GENÇLİK İKSİRİDİR ben kullandım YAŞLANMAYI DURDURUYOR. Keşke hiç sağlık sorunlarım olmasa da hep geven kapsül kullansaydım. Yaşlanmayı durduruyor, kan dolaşımını düzenliyor müthiş sonuçlar alınıyor çok teşekkürler hocam.
    KAYNAK

    Nuran Serinkaya
    GEVEN KAPSÜL vücudun GENÇLİK İKSİRİDİR ben kullandım YAŞLANMAYI DURDURUYOR. Keşke hiç sağlık sorunlarım olmasa da hep geven kapsül kullansaydım. Yaşlanmayı durduruyor, kan dolaşımını düzenliyor müthiş sonuçlar alınıyor çok teşekkürler hocam.
    KAYNAK

    Murat Arslan
    Eşim GEVEN JEL ve GEVEN KAPSÜL kullanıyor çok memnun. CİLDİNİN GERGİNLEŞTİĞİNİ, GENÇLEŞTİĞİNİ görebiliyoruz.
    KAYNAK

    Aslı Doğan
    YÜZDEKİ SARKMALAR ve KIRIŞIKLIKLAR için GEVEN SETİ + GEVEN JEL kullandım gözle görülebilir şekilde DEĞİŞİKLİKLER oldu teşekkürler hocam

    KAYNAK
    Halil Şahin
    YÜZÜMDE SİVİLCE problemlerim vardı GEVEN JEL kullanıyorum 2 haftadır YÜZÜMÜ BERRAKLAŞTIRDI SİVİLCELERİ YOK ETTİ allah razı olsun hocam

    KAYNAK
    Mahmut Kaya
    Oğlum SİĞİLLERİNDEN ayağının üzerine basamıyordu. YARA gibi olmuştu. GEVEN SETİ ile iyileşti bir şey kalmadı.
    KAYNAK

    Mahmut Kaya
    Elimde SİĞİL vardı GEVEN SETİ ve kullandım 4 haftada elimdeki SİĞİL kayboldu teşekkür ederim hocam
    KAYNAK

    Mahmut Kaya
    Hocam Allah senden razı olsun. SİĞİL için GEVEN SETİ kullandım, ürünlerinizle sağlığıma kavuştum şükür.
    KAYNAK

    Gokhan Cetin
    9 Yıldır bu SİĞİL ile yaşadım hiç iyileşmedi ve büyüdü. Hem sağlıksız hem utandıran bir görüntü. GEVEN SETİ kullandım 1 hafta sonra SİĞİLE dışarıdan ÇAY AĞACI YAĞI SÜRDÜM olayı hızlandırdım 45. GÜNDE SİĞİLDEN ESER KALMADI.
    KAYNAK

    Durmuş Durdu
    Kullanmadan yorum yapmak istemedim. Bir set bitti tekrar alcagim. İnanilnaz memnun kaldım. GEVEN SETİNİ kullandım kadınlar için birebir KAŞINTI-AKINTI ve KÖTÜ KOKU varsa mutlaka alın sayesinde mis gibiyim sıfırladı resmen. Bu markayı ilk kez denedim artık vazgeçilmez im oldu içerik efsane bravo.
    KAYNAK

    Ahmed Güneş Kasranoğlu
    İbrahim Gökçek marketin ürünlerinden GEVEN JEL harikulade Cildimi YENİLEDİ adeta.
    KAYNAK
    Konu ozgurcay tarafından (https://bitkiara.com/vb5/member/18435-ozgurcay Saat 09 August 2023, 12:14 ) değiştirilmiştir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Geven, Çin Geveni, Türkistan Geveni, Astragalus membranaceus


    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      Astragalus polisakkaritleri (PG2), Akciğer Kanserli Hastalarda Makrofajların M1 Polarizasyonunu, Dendritik Hücrelerin Fonksiyonel Olgunlaşmasını ve T Hücresi Aracılı Antikanser Bağışıklık Tepkilerini Artırır

      Oluwaseun Adebayo Bamodu , 1, 2, † Kuang-Tai Kuo , 3, 4, † Chun-Hua Wang , 5, 6 Wen-Chien Huang , 7, 8 Alexander TH Wu , 9 Jo-Ting Tsai , 10, 11 Kang- Yun Lee , 12 Chi-Tai Yeh , 1, 2, 13, * ve Liang-Shun Wang 3, 4, *
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler

      Ek Malzemeler Veri Kullanılabilirlik Bildirimi
      Git: Soyut


      Arka plan: Yakın zamanda, astragalus membranaceus'un kurutulmuş köklerindeki aktif bileşen olan Astragalus polisakkaritinin (PG2),tümör başlangıcında, metastazda makrofajlar, dendritik hücreler (DC'ler) ve sitotoksik T lenfositleri (CTL'ler) dahil olmak üzere inflamatuar hücrelerin arka plandaki rollerine karşı inflamatuar kaskadı modüle ederek metastatik hastalığı olan hastalarda kanser semptom kümelerini iyileştirir ve yaşam kalitesini (QoL) iyileştirir , ve ilerleme. Bununla birlikte, PG2'nin antikanser immünojenisitesinin ve terapötik yanıtın modülasyonundaki rolü, nispeten az araştırılmış ve belirsizliğini koruyor. Amaç: Bu çalışma, PG2'nin inflamatuar kaskadın hücresel ve biyokimyasal bileşenlerini nasıl ve ne ölçüde modüle ettiğini ve antikanser bağışıklığını ve ayrıca bu biyo-olayların akciğer kanserli hastalarda terapötik etkilerini araştırmaktadır. Yöntem ve Sonuçlar: Burada, PG2'nin küçük hücreli olmayan karsinom (NSCLC) H441 ve H1299 hücrelerinde M1/M2 makrofaj polarizasyon oranını önemli ölçüde arttırdığını gösterdik. Tümöral M1 popülasyonunun in vitro olarak PG2 ile indüklenen bu tercihli farmakolojik yukarı regülasyonu, NSCLC hücre koşullu ortam içinde tümör teşvik edici IL-6 ve IL-10 ekspresyonunun aşağı regülasyonu ile, aynı zamanda hücre proliferasyonu, klonojenisite ve tümör küresi oluşumu. NSCLC kohortumuzdan alınan klinik numuneyi kullanan ex vivo sonuçlarımız, PG2'nin ayrıca DC'lerin fonksiyonel olgunlaşmasını desteklediğini ve bunun sonucunda T hücresi aracılı antikanser bağışıklık tepkilerinin artmasını sağladı. In vitro ve ex vivo sonuçlarla tutarlı olarak, in vivo çalışmalarımız, PG2 ile tedavinin, tümörle ilişkili M2 popülasyonunun önemli ölçüde zamana bağlı tükenmesine yol açtığını, sisplatinin anti-M2 bazlı antikanser etkisini sinerjistik olarak arttırdığını ve NSCLC fare modellerinde ksenograft tümör büyümesini inhibe ettiğini gösterdi. Ayrıca, PG2 varlığında sisplatin ile ilişkili diskrazi ve kilo kaybı belirgin şekilde baskılanmıştır. Sonuç: Bu sonuçlar, M1/M2 makrofaj havuzunu modüle etmede, DC olgunlaşmasını kolaylaştırmada ve geleneksel kemoterapötik ajan olan sisplatinin antikanser etkisini sinerjistik olarak arttırmada PG2'nin terapötik olarak ilgili bir rolü olduğunu gösterir, böylece sisplatinin küratif ilişkisinin daha fazla araştırılması için temel oluşturur. PG2 vekil immünoterapi ve/veya akciğer kanserli hastalarda idame tedavisi için kullanımının klinik fizibilitesi. sisplatinin anti-M2 bazlı antikanser etkisini sinerjistik olarak arttırdı ve NSCLC fare modellerinde ksenograft tümör büyümesini inhibe etti. Ayrıca, PG2 varlığında sisplatin ile ilişkili diskrazi ve kilo kaybı belirgin şekilde baskılanmıştır. Sonuç: Bu sonuçlar, M1/M2 makrofaj havuzunu modüle etmede, DC olgunlaşmasını kolaylaştırmada ve geleneksel kemoterapötik ajan olan sisplatinin antikanser etkisini sinerjistik olarak arttırmada PG2'nin terapötik olarak ilgili bir rolü olduğunu gösterir, böylece sisplatinin küratif ilişkisinin daha fazla araştırılması için temel oluşturur. PG2 vekil immünoterapi ve/veya akciğer kanserli hastalarda idame tedavisi için kullanımının klinik fizibilitesi. sisplatinin anti-M2 bazlı antikanser etkisini sinerjistik olarak arttırdı ve NSCLC fare modellerinde ksenograft tümör büyümesini inhibe etti. Ayrıca, PG2 varlığında sisplatin ile ilişkili diskrazi ve kilo kaybı belirgin şekilde baskılanmıştır. Sonuç: Bu sonuçlar, M1/M2 makrofaj havuzunu modüle etmede, DC olgunlaşmasını kolaylaştırmada ve geleneksel kemoterapötik ajan olan sisplatinin antikanser etkisini sinerjistik olarak arttırmada PG2'nin terapötik olarak ilgili bir rolü olduğunu gösterir, böylece sisplatinin küratif ilişkisinin daha fazla araştırılması için temel oluşturur. PG2 vekil immünoterapi ve/veya akciğer kanserli hastalarda idame tedavisi için kullanımının klinik fizibilitesi. sisplatin ile ilişkili diskrazi ve kilo kaybı belirgin şekilde baskılanmıştır. Sonuç: Bu sonuçlar, M1/M2 makrofaj havuzunu modüle etmede, DC olgunlaşmasını kolaylaştırmada ve geleneksel kemoterapötik ajan olan sisplatinin antikanser etkisini sinerjistik olarak arttırmada PG2'nin terapötik olarak ilgili bir rolü olduğunu gösterir, böylece sisplatinin küratif ilişkisinin daha fazla araştırılması için temel oluşturur. PG2 vekil immünoterapi ve/veya akciğer kanserli hastalarda idame tedavisi için kullanımının klinik fizibilitesi. sisplatin ile ilişkili diskrazi ve kilo kaybı belirgin şekilde baskılanmıştır. Sonuç: Bu sonuçlar, M1/M2 makrofaj havuzunu modüle etmede, DC olgunlaşmasını kolaylaştırmada ve geleneksel kemoterapötik ajan olan sisplatinin antikanser etkisini sinerjistik olarak arttırmada PG2'nin terapötik olarak ilgili bir rolü olduğunu gösterir, böylece sisplatinin küratif ilişkisinin daha fazla araştırılması için temel oluşturur. PG2 vekil immünoterapi ve/veya akciğer kanserli hastalarda idame tedavisi için kullanımının klinik fizibilitesi.

      Anahtar Kelimeler: Astragalus polisakkarit , PG2, sisplatin, makrofajlar, monositler, M1/M2 polarizasyonu, immünoterapi, idame tedavisi, akciğer kanseri, KHDAK
      Git: 1. Giriş


      Akciğer kanseri, 2018'de yalnızca Amerika Birleşik Devletleri'nde tahmini 234.030 yeni vaka ve 154.050 ölümle dünya çapında en sık teşhis edilen malignitelerden biridir ve kanser ölümlerinin önde gelen nedenidir [ 1 ]. Küçük hücreli olmayan akciğer kanseri (KHDAK) tüm akciğer kanserlerinin yaklaşık %85'ini oluşturur ve mevcut beş yıllık sağ kalımı %20'nin altında kalır [ 1 ]. Tümör yanıt oranlarında belgelenmiş iyileşme ve daha uzun progresyonsuz sağkalım gibi hedefe yönelik tedavilerin lanse edilen terapötik başarısı [ 2] son ​​on yılda, çok dar terapötik seçicilik ve geniş uygun olmayan hasta havuzları ile sınırlandırılmıştır, bu nedenle geniş spektrumlu antikanser etkileri ve etkinliği olan yeni bir terapötik ajanın keşfini gerekli kılmıştır. Son zamanlarda, geleneksel kemoterapi ile karşılaştırıldığında, bağışıklık kontrol noktası inhibitörlerinin, özellikle programlanmış hücre ölümü proteini 1'i (PD-1) hedefleyenlerin, tekrarlayan ve ilerlemiş KHDAK'li hastaların genel sağkalımını (OS) etkili bir şekilde uzattığı gösterilmiştir [ 3 , 4 , 5 ]. Bununla birlikte, çeşitli kanserlerde bağışıklık kontrol noktası inhibitörlerinin bu bildirilen başarısına rağmen, yanıt oranı çok mütevazıdır ve hastaların %20'sinden daha azı bunlara yanıt vermiştir [ 6]. Bu kasvetli yanıt oranı, karmaşık tümör mikro-ortamı (TME) ve yanıt vermeyenlerde bağışıklık baskılayıcı hücrelerin bağlamsal zararlı etkisi ile bağlantılı olabilir.

      Düzensiz bir TME'den gelen onkojenik ipuçları bağlamında, doğanın adjuvanı olarak kapasitelerinde dendritik hücrelerin (DC'ler) ve profesyonel antijen sunan hücrelerin (APC'ler) kanserli hücrelere karşı antikanser bağışıklığını tetiklemede merkezi bir rol oynadığı kanıtlanmıştır; bu nedenle, DC tedavisinin mantığı ve sonuçta T hücre bazlı antikanser immünojenik yanıtın indüksiyonu [ 7 ]. Bu nedenle, pro-inflamatuar/anti-inflamatuar hücre dengesini modüle eden herhangi bir terapi, bu hücreleri onkojenisite alevlerini körüklemeden gelişmiş tümör öldürücü immünojenisiteye doğru yönlendirir ve kazanılmış immün ayrıcalığı ortadan kaldırır, kanserli hastalarda yüksek etkinliği olan yeni bir terapötik ajan oluşturacaktır [ 8 ]. , 9 , 10 , 11].

      Birikmiş kanıtlar, inflamatuar hücrelerin TME'yi ya doğrudan hücreden hücreye etkileriyle ya da dolaylı olarak sitokin ve kemokin üretimi yoluyla önemli ölçüde etkilediğini ve bu salgılanan inflamasyon aracılarının, tümör hücresi proliferasyonunu, anjiyogenezi ve metastazı düzenlemede spesifik roller oynadığını göstermektedir. [ 12 , 13 , 14]. Tümörle ilişkili makrofajların (TAM'ler) immünojenik rolü iyi belgelenmiş olsa da, artan bir TAM popülasyonu, kanserli hastalar için kötü prognoz ile de ilişkilendirilmiştir. Bu, tümörde yerleşik veya ilişkili makrofajların fenotipik durumundaki zamansal-uzaysal varyasyonla bağlantılı olabilir. Fenotipik olarak, makrofajlar genel olarak klasik M1 ve alternatif M2 makrofajlar olmak üzere iki biyolojik sınıfa ayrılır [ 15 , 16 ]. Th1 sitokin interferon-y, bakteriyel kısımlar ve Toll benzeri reseptör (TLR) agonistleri tarafından tahrik edilen M1 makrofajları, İnterlökin (IL)-6, IL-12, IL-23 ve tümör gibi proinflamatuar sitokinler üretir. nekroz faktörü-α (TNF-α) ve inflamatuar yanıtlarda ve antikanser bağışıklığında rol oynar [ 17 ]]. Tersine, M2 makrofajları, IL-4, IL-10, IL-13 gibi Th2 sitokinleri ile ilişkilidir ve anti-inflamatuar yanıtlarda ve tümör destekleyici sinyallerde rol oynar [ 18 , 19 , 20 ]. Önemli olarak, klinik sonuçların yararlı bir öngörücüsü olmanın yanı sıra, TAM'lerin M2'den M1 fenotipine yeniden programlanması, özellikle antikanser immünoterapisi açısından terapötik açıdan önemlidir.

      Astragalus membranaceus'un (Çince: Huang-Chi ) kurutulmuş köklerinden elde edilen aktif bileşen olan Astragalus polisakkariti (PG2), bağışıklık modülasyonu dahil olmak üzere geniş bir belgelenmiş terapötik etki yelpazesi sergiler [ 21 , 22 ]. Bununla birlikte, akciğer kanserinde PG2'nin bağışıklık bağımlı antikanser aktivitesi büyük ölçüde keşfedilmemiş ve belirsizliğini koruyor. Bu nedenle, PG2'nin kansere bağlı yorgunluğu ve diğer kanser semptom kümelerini iyileştirdiğini ve ayrıca hastaların inflamatuar kaskadının modülasyonu yoluyla metastatik hastalığı olan hastaların yaşam kalitesini (QoL) iyileştirdiğini gösteren son çalışmalarımızı takiben [ 23 , 24 ]] makrofajların ve diğer bağışıklık hücrelerinin arka planına karşı; tümörün başlaması, yayılması ve ilerlemesinde kritik roller oynamak; PG2'nin splenik DC'lerin farklılaşmış durumunda bir rol oynayabileceği önerilerinin yanı sıra; artan CD11c yüksek CD45RB düşük DC popülasyonu; ve in vitro iken Th1/Th2 oranının yukarı regülasyonu yoluyla T lenfositin gelişmiş bağışıklık fonksiyonu [ 25 ], mevcut çalışma, PG2'nin, tercihen M1/M2 makrofaj oranını yukarı regüle ederek, proinflamatuar oranı çarpıttığını varsaymış ve göstermiştir. /anti-inflamatuar sinyalleme, bir antikanser fenotipine doğru dengelenir ve NSCLC'li hastalarda kanserli hücreler tarafından önceden edinilmiş bağışıklık ayrıcalığını baskılar.

      Git: 2. Malzemeler ve Yöntemler

      2.1. Kimyasallar ve tepkimeler


      PhytoHealth'ten (PhytoHealth Corporation, Taipei, Tayvan) elde edilen Astragalus polisakarit (PG2) liyofilize toz ve Sigma-Aldrich'ten (St Louis, MO, ABD) satın alınan sisplatin, 10 mM stok çözeltileri oluşturmak için dimetil sülfoksit (DMSO) içinde çözündürüldü. Verapamil, Hoechst 33342 ve metiltiazolildifenil-tetrazolyum bromür (MTT) boyası da Sigma-Aldrich'ten (St. Louis, MO, ABD) satın alındı. CD80, CD206, NF-KB p65, CD11b, CD31, IL-4, IL-6, IL-10, IL-13, Interferon gama (IFN-y) ve β-aktin'e karşı birincil antikorlar Cell Signaling Technology'den satın alındı (Boston, MA, ABD), insan rekombinant IL-4, IL-13, IFN-y, granülosit-makrofaj koloni uyarıcı faktör (GM-CSF) ve lipopolisakkarit (LPS) R&D Systems, Inc.'den (Minneapolis) elde edildi. , MN, ABD). 2.2. Periferik Kan Mononükleer Hücreleri (PBMC'ler) Dendritik Hücrelerin Kültürü ve İzolasyonu


      Bu çalışma, Taipei Tıp Üniversitesi'nin araştırma etiği ve prosedürleri kurumsal inceleme kurulu tarafından onaylandı (Onay no.: 2018-IRB-0027). Bilgilendirilmiş onam alındıktan sonra, akciğer kanserli hastalardan ( n = 17) periferik kan örnekleri alındı . PBMC'lerin izolasyonundan sonra, %5 nemlendirilmiş CO2 içinde 96 oyuklu derin yuvarlak plakaların oyuk başına %10 fetal buzağı serumu (FCS) ile desteklenen tam hücre büyüme ortamının mL'si başına 1 x 10⁶ PBMC tohumlandıatmosfer, 37 °C'de, gece boyunca. Daha sonra, PBMC'ler, 7 mL'lik bir son hacimde 10 mL doku kültürü kaplarına aktarıldı ve 25 ng/ml forbol 12-miristat 13-asetat (PMA) varlığında veya yokluğunda 24 saat, 20 ng/ml IL için inkübe edildi. -4 ve IL-13 24 saat, 20 ng/ml LPS ve 24 saat INF-y veya 48 saat için 16 mg/mL PG2 , 37 °C'de %5 CO2 ile nemlendirilmiş atmosferde . CD80+ veya CD206+ makrofajlarının yüzdesi daha sonra akış sitometrisi ile belirlendi. Çalışma Kasım 2012'de başladı ve Haziran 2017'de tamamlandı (klinik araştırma bilgileri: IRB No.: 201205017 ve NCT01720550 ). 2.3. Hücre Hatları ve Kültür


      Bu çalışmada kullanılan insan akciğer kanseri H441 (ATCC HTB-174), H1299 (ATCC CRL-5803), H1437 (ATCC CRL-5872) ve murin Lewis Lung kanseri (LLC1, ATCC CRL-1642) hücre hatları, ATCC (Amerikan Tipi Kültür Koleksiyonu, Manassas, VA, ABD) ve Roswell Park Memorial Institute (RPMI)-1640 (Invitrogen, San Diego, CA, ABD) veya Dulbecco'nun modifiye Eagle's ortamında (DMEM, Gibco-Life Technologies Inc.) kültürlendi. , Gaithersburg, MD, USA) nemlendirilmiş %5 CO2 içinde 37 °C'de %10 ısıyla inaktive edilmiş fetal sığır serumu (FBS, Invitrogen), 100 UI/mL penisilin ve 100 μg/mL streptomisin ile desteklenmiştiratmosfer. Hücreler alt kültürlendi veya ≥%80 birleştiğinde kullanıldı. İnsan monositik THP-1 hücreleri (ATCC TIB-202; American Type Culture Collection, Manassas, VA, ABD), %10 ısıyla inaktive edilmiş FBS (Invitrogen), 10 mM HEPES (Gibco) ile desteklenen RPMI-1640 (Invitrogen) içinde kültürlendi. -Life Technologies Inc., Gaithersburg, MD, ABD), 2,5 g/L D-glukoz (Merck Millipore, Jaffrey, NH, ABD), 1 mM piruvat (Gibco-Life Technologies Inc., Gaithersburg, MD, ABD) ve 50 pM p-merkaptoetanol (Gibco-Life Technologies Inc., Gaithersburg, MD, ABD).

      THP-1 monositleri, THP-1 hücrelerinin 25 ng/mL PMA (Sigma-Aldrich Corporation, St. Louis, MO, ABD) içinde 24 saat kuluçkalanması ve ardından 24 saat daha RPMI-1640 içinde kuluçkalanmasıyla makrofajlara farklılaştırıldı. . Monosit türevli makrofajlar (MDM'ler), 20 ng/ml IFN-y (R&D sistemi, Minneapolis, MN, ABD) ve 10 pg/ml LPS (Sigma-Aldrich Corporation, St. Louis, MO) ile inkübasyon yoluyla M1 makrofajlarına polarize edildi. , ABD), M2 makrofajları ise MDM'lerin 20 ng/ml IL-4 ve IL-13 (R&D Systems, Minneapolis, MN, ABD) içinde inkübe edilmesiyle oluşturulmuştur.

      Ortak kültür deneyleri için, MDM'ler altı 0.4 um gözenekli Transwell membran ekine (Corning Inc., Corning, NY, ABD) ekildi. MDM'ler ve akciğer kanseri hücre hatları, 0,5 mM L-glutamin (Sigma-Aldrich Corporation, St. Louis, MO, ABD) ve 3,75 g/L D-glukoz (Sigma) ile desteklenmiş RPMI-1640 ortamında 24 için birlikte kültürlendi. PG2 ve/veya sisplatin ile veya bunlar olmadan inkübasyondan h. THP-1 hücrelerinin PMA (Sigma) içinde kültürlenmesinden elde edilen süpernatan, monosit-şartlandırılmış ortam (MCM) olarak kullanıldı. 2.4. Batı lekesi


      Hücreler, proteaz inhibitör kokteyli ve fenilmetilsülfonil florür (PMSF; Sigma-Aldrich Corporation, St. Louis, MO, ABD), 20μg protein ile desteklenmiş Radyo-İmmünopresipitasyon Testi (RIPA) lizis tamponunda (Pierce, Rockford, IL, ABD) lize edildikten sonra lizat numuneleri şerit başına %10 sodyum dodesil sülfat poliakrilamid jel elektroforez (SDS-PAGE) jellerine (Bio-Rad) yüklendi; elektroforezden sonra, ayrılan protein lekeleri nitroselüloz membranlara (Millipore Corporation, Bedford, MA, ABD) aktarıldı, membranlar non-tween 20 (TBST) ile Tris tamponlu tuzlu su içinde %5 yağsız süt ile inkübe edildi. spesifik bağlanma ve daha sonra CD80'e (1:1000, #15416, Cell Signaling Technology, Inc., Danvers, MA, ABD), CD206/MRC1 (1:1000, #91992, Cell) karşı birincil antikor ile 4 °C'de gece boyunca inkübe edildi Sinyal Teknolojisi, Inc., Danvers, MA, ABD) veya β-aktin (1:1000, #3700, Sigma-Aldrich Corporation, St. Louis, MO, ABD), TBST'de üç kez yıkandı ve daha sonra yaban turpu peroksidaz (HRP)-konjuge keçi içinde inkübe edildi anti-tavşan (1:5000) veya anti-fare (1:3000) ikincil antikor (Millipore Corporation, Bedford, MA, ABD). Daha sonra, BioSpectrum Görüntüleme Sistemi (UVP, Upland, CA, ABD) ile yapılan bant tespiti ve görüntüleme için Pierce ile güçlendirilmiş kemilüminesans (ECL) western blot substratı (Pierce) kullanıldı. 2.5. Akış Sitometrisi Analizleri


      THP-1 hücrelerini Invitrogen LIVE/DEAD Fixable Red Dead Cell Stain kitinde (# L23102 ) boyadıktan sonra, Thermo Fisher Scientific Inc., Waltham, MA, ABD), canlı hücreler, %0.5 bovin serum albümini (BSA)/1mM, etilendiamintetraasetik asit (EDTA)/%0.01 içinde seyreltilmiş 10μg/mL insan immünoglobulin G (IgG) kullanılarak bloke edildi, 10 dakika boyunca buz üzerinde sodyum azid boyama tamponu ve daha sonra anti-insan CD206 (MMR)-PE antikoru (#12-2069-41, 1:50, eBioscience, Thermo Fisher Scientific Inc., Waltham, MA, ABD) ile inkübe edildi. 15 dakika boyunca buz üzerinde %2 paraformaldehit (PFA) içinde hücre fiksasyonundan önce 1 saat buz üzerinde. Daha sonra hücreler, anti-insan CD80 (B7-1) Floresein izotiyosiyanat (FITC) antikorları (#11-0809-41, 1:50, eBioscience, Thermo Fisher Scientific Inc., Waltham, MA, ABD) ile 0.5'te inkübe edildi. 45 dakika boyunca buz üzerinde % saponin, boyama tamponu ile yıkandı ve ardından BD FACSCanto II sistemi (BD Biosciences, Thermo Fisher Scientific Inc. Waltham, MA, ABD). Elde edilen veriler, Flowjo yazılımı v. 9.6.2 (FlowJo, LLC, Tree Star, Inc., Ashland, OR, ABD) kullanılarak analiz edildi. 2.6. Metiltiazolildifenil-Tetrazolyum Bromür (MTT) Canlılık Testi


      24 oyuklu plakalarda 1.8 x 10⁵ hücre / kuyuda tohumlanan THP-1 hücrelerinin yukarıda açıklandığı gibi MDM'lere farklılaşmasından sonra, MDM'ler IFN-y ve LPS'de, ardından 500 ul MTT reaktifinde 2 saat süreyle inkübe edildi. 37 °C'de nemlendirilmiş %5 CO2 atmosferli bir inkübatörde. MCM dikkatlice çıkarıldı, her kuyudaki MDM hücrelerine 1 mL lizis tamponu eklendi, hücreler 70 rpm'de 37 °C'de 1 saat hafifçe çalkalandı ve daha sonra hücre canlılığı ile ilgili absorbans 450 nm dalga boyunda okundu bir SpectraMax i3x mikroplaka okuyucu kullanarak (Molecular devices, Kim Forest Enterprises Co., Ltd., New Taipei City, Tayvan). 2.7. Hücre Göçü ve İstila Deneyleri


      Göç potansiyelini değerlendirmek için, NSCLC hücreleri 6 oyuklu plakalarda ≥%90 birleşme noktasına kültürlendi ve daha sonra steril sarı pipet uçları kullanılarak tek katmanlı birleşik hücrelerin medyan ekseni boyunca bir çizik yapıldı. Ayrılmış hücreleri ve hücresel kalıntıları dikkatlice yıkamak için fosfat tamponlu salin (PBS) kullanıldı ve belirtilen süre boyunca çizik-yara kapanması izlendi. Rastgele seçilen beş görsel alandan soyulmuş alana göç eden ortalama hücre sayısı, belirtilen zaman noktalarında yara kapanmasının karşılaştırılması için her tabakta belirlendi.

      İstila deneyi için, 8 m gözenekli membranlı (BD Biosciences, San Jose, CA, ABD) matrigel kaplı transwell ekleri 24 oyuklu plakalara yerleştirildi. Daha sonra, 3 x 10⁴ hücre, üst bölmelerde 100 ul FBS içermeyen ortama ekildi ve zar yoluyla, kemoatraktan olarak hizmet eden %10 FBS ile 600 ul tam büyüme ortamı içeren alt bölmeye girmesine izin verildi. Hücreler, 48 saat boyunca 37 °C'de %5 CO2 ile nemlendirilmiş atmosferde inkübe edildi . İstila edilmemiş hücreler steril pamuk tomurcukları ile her bir ekin üst yüzeyinden dikkatlice kazınırken, ek membranın alt yüzeyindeki istila edilmiş hücreler 37 °C'de 30 dakika boyunca %0.1 kristal viyole içinde inkübe edildi, iki kez ile yıkandı. 1X PBS ve mikroskop altında görüntülendi. 2.8. Koloni Oluşum Deneyi


      H441 veya H1299 hücreleri, tam büyüme ortamı içeren 6 oyuklu plakalara (Corning Inc., Corning, NY, ABD) 1.5 x 10⁴ / oyuk yoğunlukta ekildi ve 12 gün boyunca nemlendirilmiş % 5 CO2 atmosferinde inkübe edildi. 37 °C'de. Çapı ≥100 μm olan oluşan koloniler fotoğraflandı ve 45 dakika boyunca %0.01 (a/h) kristal menekşe ile boyandıktan sonra mikroskop altında rastgele seçilen beş örtüşmeyen görsel alandan sayıldı. 2.9. Enzim Bağlantılı İmmünosorbent Testi (ELISA)


      Hücre stimülasyonu ve/veya tedavisinden sonra hücre kültürü ortamı, üreticinin talimatları izlenerek ELISA kitleri (Abcam plc., Cambridge, MA, ABD) kullanılarak salgılanan IL-6 (ab178013) ve IL-10 (ab185986) sitokin için test edildi. Absorbans, bir iMark mikroplaka absorbans okuyucusu (Bio-Rad Laboratories, Inc., Hercules, CA, ABD) kullanılarak 450 nm'de ölçüldü ve salgılanan sitokinlerin konsantrasyonu, standart eğriler kullanılarak hesaplandı. 2.10. Singeneik Fare Modellerinde Tümör İmplantasyonu ve Büyüme


      Altı ila sekiz haftalık dişi C57BL/6 fareleri ( n = 15, medyan ağırlık: 24.5 ± 1.8 g) Ulusal Laboratuvar Hayvanları Merkezi'nden (NARlabs, Taipei Şehri, Tayvan) satın alındı ​​ve MacKay Memorial Hastanesi hayvan araştırma tesisinde barındırıldı. belirli patojen içermeyen (SPF) koşullar altında. Tüm hayvan prosedürleri ve deneysel yöntemler, laboratuvar hayvanlarının bakımı ve kullanımına ilişkin Ulusal Sağlık Enstitüleri yönergeleri ile uyumluydu [ 26 ] ve MacKay Memorial Hastanesi'ndeki Hayvan Bakım ve Kullanıcı Komitesi tarafından onaylandı (Affidavit of Approval of Animal Use Protocol #MMH- LAC-107-001). Bir grup C57BL/6 faresi ( n = 10), 1.5 x 10⁶ LLC1 hücresi ile aşılanırken , başka bir grup ( n= 5) intraperitoneal olarak 20 ul PBS içinde 1 x 10⁶ H1437 hücreleri ve 5 x 10⁵ THP-1 hücreleri ile aşılandı . Takip eden tümörlerin boyutu, pergeller kullanılarak 17 hafta boyunca haftalık olarak ölçüldü ve tümör hacmi ( v ), v (mm 3 ) = [ l x w 2 ]/2 formülü kullanılarak hesaplandı , burada l tümörün en uzun çapının uzunluğu ve w en kısa çapın uzunluğudur. Bir kez 200 mm 3 tümör hacmielde edildi, fareler rastgele tedavi ve kontrol gruplarına ayrıldı. PG2 (3 mg/kg/gün) veya araç (%0.1 DMSO), 16 hafta boyunca iki haftada bir intraperitoneal olarak enjekte edildi. Fareler daha sonra insanca kurban edildi ve akciğer tümör dokuları çıkarıldı ve analiz edildi. 2.11. Etik Onayı ve Katılım İzni


      Çalışma Kasım 2012'de başladı ve Haziran 2017'de tamamlandı (Klinik araştırma bilgileri: IRB No.: 201205017 ve NCT01720550 ). Tüm hayvan prosedürleri ve deneysel yöntemler, laboratuvar hayvanlarının bakımı ve kullanımına ilişkin Ulusal Sağlık Enstitüleri yönergeleriyle uyumluydu (National Academies Press (ABD), 2011) ve MacKay Memorial Hastanesi'ndeki Hayvan Bakım ve Kullanıcı Komitesi tarafından onaylandı (Affidavit of Approval Hayvan Kullanım Protokolü # MMH-LAC-107-001). 2.12. İstatistiksel analiz


      Tüm veriler, üç kopya halinde en az üç kez gerçekleştirilen testlerin ortalamasının (SEM) ortalama ± standart hatasını temsil eder. İstatistiksel analiz, Statistical Package of Social Sciences yazılımı (IBM Corp. Released 2016. IBM SPSS Statistics for Windows, Version 24.0. Armonk, NY: IBM Corp.) kullanılarak yapıldı. 2 grup arasındaki karşılaştırma iki taraflı Student t testi kullanılarak yapılırken, ≥3 gruplar arasında karşılaştırma için tek yönlü varyans analizi (ANOVA) kullanıldı. Bir p değeri < 0.05 istatistiksel olarak anlamlı kabul edildi.

      Git: 3. Sonuçlar

      3.1. Makrofajlar, Farklı Enflamatuar Sitokin Uyaranlarına Farklı Yanıtlar Veriyor


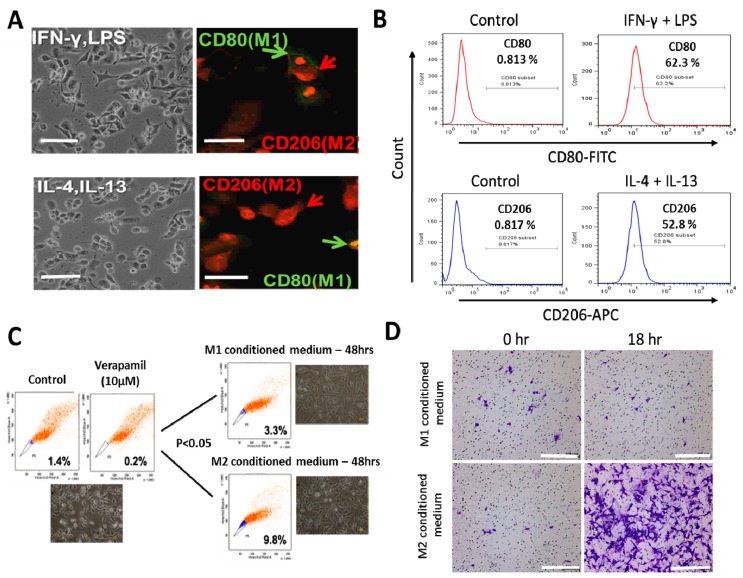
      PMA'ya maruz kalan insan THP-1 monositlerinin makrofajlara (MDM'ler) farklılaşmasından ve makrofaj polarizasyonu için IFN-y/LPS veya IL-4/IL-13 ile stimülasyondan sonra (Şekil 1A), immünofloresan boyama ve akış sitometrisi, sırasıyla M1- ve M2- polarize makrofajlar için yerleşik makrofaj belirteçleri, CD80 ve CD206'nın ifadesine dayalı olarak elde edilen hücrelerin fonksiyonel fenotipini doğrulamak için kullanıldı. IFN-y/LPS aktivasyonundan sonra CD80+ M1 popülasyonunda %0.813'ten %62.3'e önemli bir artış kaydedildi (Şekil 1B, üst panel), IL-4/IL-13 uyarımı CD206+ M2 makrofajlarında %0.817'den %52,8'e bir artışa neden olurken (Şekil 1B, alt panel). TAM'leri kanser kök hücre (CSC'ler) benzeri fenotiplerin [ 17 , 27 ] elde edilmesinde ve korunmasında dahil eden önceki çalışmalar nedeniyle, M1 veya M2 ile koşullandırılmış ortamın H1299 yan popülasyonu ve CSC'ler benzeri fenotipler üzerindeki olası etkilerini inceledik. IL-4/IL-13'e maruz bırakılan kültürden elde edilen süpernatandan türetilen M2 ile koşullandırılmış ortamın, M1 şartlandırılmış ortam grubuna kıyasla (M2'ye karşı M1: 2.97 kat) 48 saatlik inkübasyondan sonra yan popülasyonu önemli ölçüde arttırdığını gözlemledik. artış, p < 0.05) (Şekil 1C). Ayrıca, M1-şartlandırılmış ortam ile tedavi edilen H1299 hücreleri ile karşılaştırıldığında, M2-şartlandırılmış ortama maruz kalma, 18 saatlik zaman noktasında önemli ölçüde daha fazla sayıda istila edilmiş hücre ortaya çıkardı (Şekil 1D).

      Şekil 1
      Farklı inflamatuar sitokin uyaranlarına farklı makrofaj yanıtı. ( A ) Sırasıyla tip 1 sitokin IFN-y ve lipopolisakarit (LPS) veya tip 2 sitokin IL-4 ve IL-13 kullanılarak M1 veya M2 fonksiyonel fenotipine monosit türevli makrofaj (MDM) polarizasyonunu gösteren morfolojik ve immünositokimyasal görüntüler. ( B ) Akış sitometri analizi kullanılarak sırasıyla IFN-y/LPS veya IL-4/IL-13 ile tedaviden sonra CD80+ M1 ve CD206+ M2 MDM'lerde artışlar görüldü. Yeşil oklar CD80+ M1 makrofajını gösterirken kırmızı oklar CD206+ M2 makrofajlarını gösterir. ( C ) Floresansla aktive olan hücre sınıflandırma (FACS) tahlili kullanılarak M1 ve M2 hücre sınıflandırmasının ve izolasyonunun akış sitometrisi ve morfolojisi görüntüleme. ( D) M1 şartlandırılmış ortam ile muamele edilmiş H1299 hücreleri ile karşılaştırıldığında, M2 şartlandırılmış ortam ile kültürlenen H1299 hücreleri, matrigel çalışmasında 18 saatte daha yüksek istila kabiliyeti sergilemiştir. APC: antijen sunan hücre. 3.2. PG2, IL-4/IL-13'ün İndüklediği M2 Polarizasyonunu Doza Bağlı Olarak Aşağı Düzenlerken M1 Polarizasyonunu Artırır


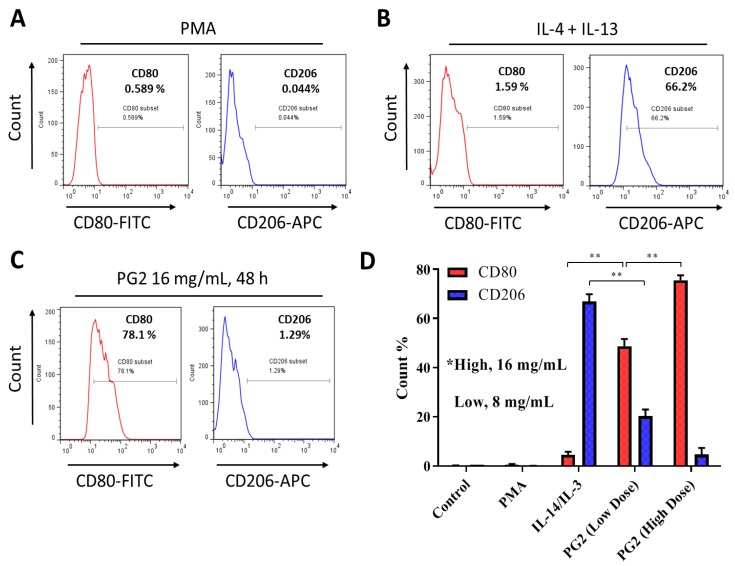
      Son çalışmalarımızda [ 23 , 24 ] belgelenmiş immünomodülatör aktivitelerinin arka planına karşı [ 21 , 22 , 26 ] gözlemlenen PG2'nin terapötik aktivitelerine dair bazı mekanik içgörüler elde etmek için PG2'nin M1/M2 makrofaj üzerindeki etkisini ayrıca araştırdık. MDM'ler ile birlikte kültürlenmiş NSCLC hücre hattı H441'de eğrilik. Sonuçlarımızda gösterildiği gibi, PMA ile tedavi edilen kontrol grubuyla karşılaştırıldığında, CD206+ M2-polarize MDM popülasyonu, IL-4/IL-13'e maruz kaldıktan sonra %0.044'ten %66,2'ye yükselirken, CD80+ M1 makrofajlar %0.589'dan arttı %1,59'a kadar (şekil 2A, B). Paralel tahlillerde, 16 mg/mL PG2'ye 48 saat maruz kalma, CD80+ M1-polarize MDM havuzunu tedavi öncesi %1.59 seviyesinden %78.1'e önemli ölçüde genişletti. Tersine, 16 mg/mL PG2, CD206+ M2 hücrelerini (51.32 kat, p < 0.01) belirgin şekilde azalttı (şekil 2C). PG2 dozunun (8 mg/mL) yarıya indirilmesi, M1/M2 popülasyonunda daha az derecede de olsa benzer çarpıklığa neden oldu (şekil 2D).

      şekil 2
      Astragalus polisakkariti (PG2), M1 polarizasyonunu geliştirir ve IL-4/IL-13 kaynaklı M2 polarizasyonunu aşağı regüle eder. ( A ) forbol 12-miristat 13-asetat (PMA) içinde 24 saat inkübasyondan sonra THP-1 monositinin makrofajlara farklılaşmasını gösteren akış sitometrik analizlerinden görüntüler , ( B ) IL-4 ve IL-13'te MDM inkübasyonu CD206 yüksek CD80 düşük M2 fenotipi, ( C ) MDM'nin PG2 16 mg/mL içinde 48 saat kuluçkalanması bir CD80 yüksek CD206 düşük M1 fenotipini indüklemiştir. ( D ) IL-4/IL-13 ve düşük doz (8 mg/mL) veya yüksek doz (16 mg/mL) PG2 tedavisinin M1–M2 polarizasyonu üzerindeki farklı etkisinin grafiksel bir temsili. **p < 0.01 3.3. M1 Makrofaj Polarizasyonunun PG2 Tarafından Arttırılması, MDM'lerin LPS/IFN-y Stimülasyonunun Etkisine Benzerdir


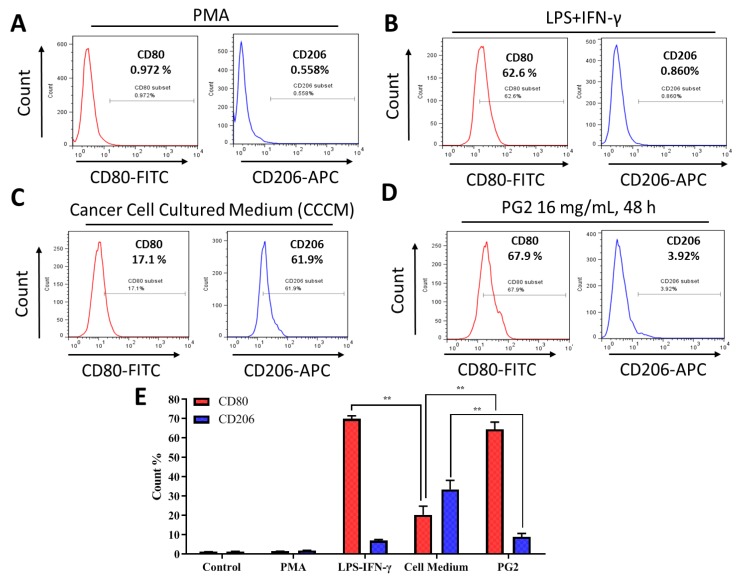
      Translasyonel alaka için, ayrıca PG2'nin M1-destekleyici aktivitesini klasik LPS/IFN-y-uyarımlı M1 polarizasyonununkiyle karşılaştırdık. İlk olarak, PMA ile farklılaştırılmış M1- ve M2-polarize MDM'ler (Figür 3A) LPS/IFN-y ile tedavi edildi veya H1299 veya H441 hücrelerinin önceden kültürlenmesinden elde edilen kanser hücresi kültür ortamında (CCCM) büyütüldü. Beklendiği gibi, 40 ng/mL LPS ve 200 ng/mL IFN−y'ye maruz kalma, CD80+ M1 MDM popülasyonunu %62,6 ( p < 0,05) ve buna karşılık gelen CD206+ M2 MDM'lerde %0,860 ( p < 0,05) artış (p < 0,05) artırdı (Figür 3B). Nispeten, polarize MDM popülasyonunun CCCM'ye maruz kalması M1 ve M2 makrofajlarında sırasıyla %17.1 ( p < 0.05) ve %61.9 ( p < 0.01) artış sağladı (Figür 3C). İlginç bir şekilde, CCCM ile muamele edilmiş MDM'lerin 48 saat boyunca 16 mg/mL PG2 ile müteakip muamelesi, CD80+ M1'de %67.9'luk bir artış ve CD206+ M2 hücrelerinde ~%58'lik bir azalmaya neden oldu (Figür 3D, E). Bu sonuçlar, PG2 muamelesi ile M1 polarizasyonunun indüklenmesinin, LPS/IFN-y stimülasyonu ile ortaya çıkana benzer olduğunu ve PG2 muamelesinin, M1/M2 oranının tercihli bir şekilde arttırılmasıyla CCCM ile indüklenen M2-eğik makrofaj havuzunu etkili bir şekilde tersine çevirdiğini gösterir.

      Figür 3
      PG2 tarafından M1 makrofaj polarizasyonunun arttırılması, MDM'lerin LPS/IFN-y stimülasyonunun etkisine benzer. ( A ) THP-1 monositinin PMA'da 24 saat inkübasyondan sonra makrofajlara farklılaşmasını gösteren akış sitometrik analizlerinden görüntüler; ( B ) IFN-y ve LPS'ye maruz kaldıktan sonra MDM'ler, bir CD80 yüksek CD206 düşük M1 fenotipini indükledi; ( C ) kanser hücresi kültür ortamı (CCCM) %17.1 CD80+ ve %61.9 CD206+ MDM'leri indükledi; ( D ) CCCM'de önceden inkübe edilen MDM'lerin PG2 tedavisi, IFN-y/LPS maruziyetine benzer bir CD80 yüksek CD206 düşük M1 fenotipini indükledi; ( E) IFN-y/LPS, CCCM ve 16 mg/mL PG2 tedavisinin M1–M2 polarizasyonu üzerindeki farklı etkisinin grafiksel bir temsili. PG2, IFN-y/LPS maruz kalma etkisine benzer M1 fenotipini geliştirdi. ** p < 0.01 3.4. PG2, Anti-inflamatuar Sitokinlerin Tümör Destekleyici Etkilerini Bastırır ve M2 Koşullu Ortam Tarafından İndüklenen NSCLC Kök Hücre Benzeri Fenotipleri Engeller


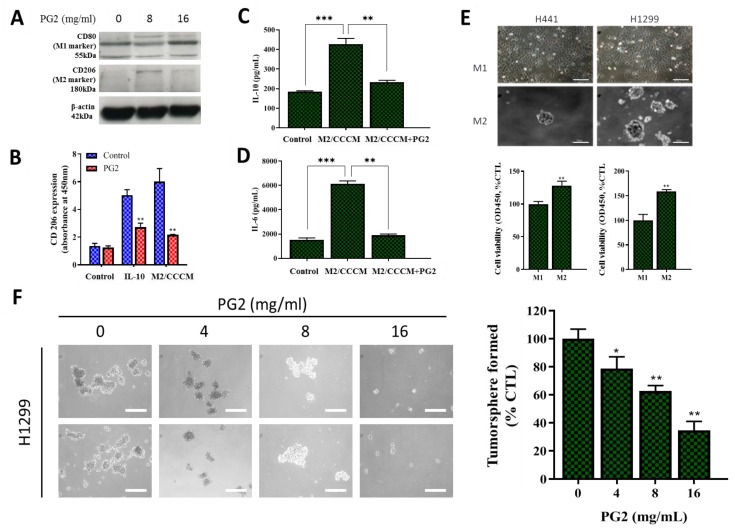
      Ayrı deneylerde, PG2 modülasyonlu CD80+M1/CD206+M2 oranının NSCLC'nin CSC benzeri fenotiplerini etkileyip etkilemediğini, nasıl ve ne ölçüde etkilediğini değerlendirdik. Daha önceki sonuçlarla tutarlı olarak, western blot analizleri, PG2'nin CD80 proteininin ekspresyon seviyesini yukarı regüle ederken, CD206 protein ekspresyonunu aşağı regüle ettiğini gösterdi (Şekil 4A). Ayrıca, PG2'nin, kontrol grubu ile karşılaştırıldığında (~2.58 kat, p < 0.01) tümör teşvik eden CD206+ hücrelerinin anti-inflamatuar IL-10 ile indüklenen proliferasyonunu önemli ölçüde bastırdığını gösterdik ve bu, PG2 ile indüklenen 2.93'e benzerdi. CCCM'de kültürlenen M2 makrofajları tarafından CD206 ifadesinde kat ( p < 0.01) azalma (Şekil 4B). ELISA kullanan doğrulama deneylerinde, M2 makrofajlar tarafından önemli ölçüde arttırılmış IL-10 (2.21 kat, p < 0.001) ve IL-6 (3.33 kat, p < 0.001) üretiminin 16 mg/ mL PG, IL-10 ve IL-6'da sırasıyla 2.05 kat ( p < 0.01) ve 3.16 kat ( p < 0.01) azalma ile yansıtıldığı gibi (Şekil 4CD). Bu bulguların ışığında, in vitro NSCLC kök hücre modellerini kullanarak PG2'nin CSC benzeri fenotip üzerindeki etkisini inceledik. İlginç bir şekilde, büyük ölçüde yapışık kalan kültürlenmiş M1-MCM'lerin aksine, kültürlenmiş M2-MCM'lerin büyük ölçüde ankrajdan bağımsız bir fenotip kazandığını ve in vitro CSC modelleri olan tümör küreleri oluşturma yeteneğinin arttığını gözlemledik (Şekil 4E, üst panel). Bu artan tümör küresi oluşturma yeteneği, H1299 hücrelerinde daha belirgindi. Ek olarak, M1-MCM'lerle birlikte kültürün H1299 (I.27 kat, p < 0.01) ve H441'in (I.56 kat, p < 0.01) canlılığında ve/veya proliferasyonunda orta derecede bir azalmaya neden olduğunu gözlemledik. ) hücreler, M2 ortak kültürlü gruplarla karşılaştırıldığında (Şekil 4E, alt panel). 0 – 16 mg/mL PG2 ile tedavi, M2 ile birlikte kültürlenmiş H1299 hücrelerinden doza bağlı bir şekilde canlılığı önemli ölçüde bastırdı ve oluşan tümör kürelerinin morfolojik tutarlılığını bozdu (Şekil 4F). Bu veriler, in vitro olarak M2 makrofaj polarizasyonunun ve CSCs-fenotip ediniminin etkili bir inhibitörü olarak PG2 için varsayılan bir rol önerir.

      Şekil 4
      PG2, tümör teşvik eden anti-inflamatuar sitokinlerin salgılanmasını negatif olarak modüle eder ve M2-MCM ile indüklenen kanser kök hücre benzeri NSCLC hücrelerinin fenotipini inhibe eder. ( A ) PG2 tedavisinden sonra MDM'lerde CD80'in doza bağlı yukarı regülasyonunu ve CD206 protein ekspresyonlarının aşağı regülasyonunu gösteren Western blot. ( B ) PG2'nin, tedavi edilmeyen kontrol grubuyla karşılaştırıldığında, IL-10 ile geliştirilmiş M2 makrofaj çoğalmasını ve CCCM ile yetiştirilen M2 popülasyonunu önemli ölçüde inhibe ettiğini gösteren ELISA sonucunun temsili histogramı. 16 mg/mL PG2 maruziyetinin M2 hücreleri tarafından CCCM ile geliştirilmiş ( C ) IL-10 ve ( D ) IL-6 salgılanmasını önemli ölçüde tersine çevirdiğini gösteren ELISA histogramı . ( E ) Fotoğraf ( üst panel ) ve grafik (alt panel ) görüntüleri, M1-MCM ile birlikte kültürlenen H441 ve H1299 hücrelerinin yapışık kaldığını, M2-MCM birlikte kültürlenen hücrelerin ise yapışmadan bağımsız bir kanser kök hücresi (CSC) fenotipi elde ettiğini gösterir. ( F ) PG2, M2/H1299 ortak kültüründen büyütülen tümör kürelerinin yaşayabilirliğini doza bağlı bir şekilde inhibe etti. * p < 0.05, ** p < 0.01, *** p < 0.001; β-aktin, yükleme kontrolü olarak görev yaptı. 3.5. PG2, Syngeneic C57BL/6 Farelerinde Tümorijenisiteyi ve Metastazı Bastırır ve İnflamasyonla İlişkili Makrofaj Aktivitesini ve Anjiyogenezi Modüle Ederek Cisplatinin İn Vivo Antikanser Etkisini Güçlendirir


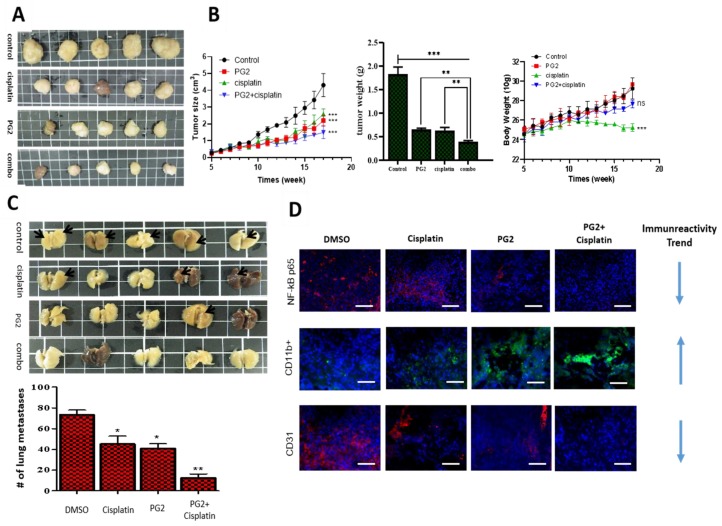
      Ek olarak, PG2'nin mevcut kemoterapi ile kombinasyon potansiyelini, singeneik LLC1 tümör taşıyan C57BL/6 farelerinde NSCLC için birinci basamak bir kemoterapötik ajan olan PG2 ve/veya sisplatinin farmakolojik etkisini karşılaştırmalı olarak analiz ederek değerlendirdik [ 28 , 29 ]. Sisplatin veya PG2 monoterapisinin, 17 hafta boyunca singeneik farelerde oluşan tümörlerin boyutunu ve ağırlığını azaltırken, 17. haftada tümör boyutunda sırasıyla %48.5 ( p < 0.001) veya %53.4 ( p < 0.001) azalma olduğunu gösterdik. , sisplatin/PG2 kombinasyonu tümör boyutunda %74.5 ( p < 0.001) azalmaya neden oldu ( p < 0.001) (Şekil 5A, B). Klinik açıdan anlamlı olarak, sisplatinin farelerin vücut ağırlığında önemli bir azalmaya ( p < 0,001) neden olurken, tek başına veya sisplatin ile kombinasyon halinde PG2 ile tedavi edilen farelerde belirgin bir kilo kaybının görülmediğini gözlemledik (Şekil 5B). Daha ilginç olarak, %71 kayda değer metastaz nodülleri olan araç (DMSO) ile tedavi edilen farelere kıyasla, sisplatin tedavisinin metastaz nodüllerinin sayısını %39.3 ( p < 0.05) azalttığını, PG2 tedavisi ve PG2/cisplatin ise gözlemledik . kombinasyonu , sayılan metastaz nodüllerinin sayısında %75.4 ( p < 0.01) ve %91.8 ( p < 0/01) azalma sağladı (Şekil 5C). Bu veriler, PG2'nin sisplatinin antikanser etkisini sinerjistik olarak arttırdığını ve PG2'nin tek başına veya kombinasyon halinde, NSCLC fare modellerinde in vivo olarak tümör büyümesini ve spontan akciğer metastazını etkili bir şekilde bastırdığını gösterir.

      Şekil 5
      PG2, singeneik C57BL/6 farelerinde tümör oluşumunu ve metastazı baskılar ve inflamasyonla ilişkili makrofaj aktivitesini ve anjiyogenezi modüle ederek in vivo sisplatin antikanser etkisini güçlendirir. ( A ) Fotoğraf görüntüleri, 1.5 x 10³ LLC1 hücreleri ile aşılanmış singeneik C57BL/6 farelerinde cisplatin ve/veya PG2'nin antikanser etkisini gösterir . ( B ) LLC1 hücreleri ile aşılanmış singeneik C57BL/6 farelerinde sisplatin ve/veya PG2'nin tümör boyutu, tümör ağırlığı ve vücut ağırlığı üzerindeki etkisinin grafiksel gösterimi. ( C ) Fotoğraf görüntüleri, LLC1 hücreleri ile aşılanmış singeneik C57BL/6 farelerinde sisplatin ve/veya PG2'nin metastaz üzerindeki etkisini gösterir. ( D) İmmünofloresan boyama, tek başına PG2 veya sisplatinin beta alt birimi (NF-KB), CD11b ve CD31 ekspresyonunu hafifçe azalttığını, sisplatini PG2 ile birleştirmek ise doku örneğinde ekspresyonlarını önemli ölçüde inhibe ettiğini gösterdi. Kırmızı ok, karaciğer metastazı; ns, önemli değil; * p < 0.05, ** p < 0.01, *** p < 0.001; DMSO, dimetil sülfoksit

      Gözlenen PG2 farmakolojik aktivitelerine dair bazı mekanik bilgiler elde etmek için, bunun inflamatuar kaskadın kanser-komplike bileşeni, nükleer faktör kappa proteini, beta alt birimi (NF-KB) [ 30 ], pro-anjiyogenik işaretleyici CD31, üzerindeki etkisini inceledik. ve proinflamatuar makrofaj markörü CD11b [ 31 ]. Farelerden elde edilen tümör numunelerini kullanarak, tek başına 0,5 mg/kg/gün sisplatin, tek başına 3 mg/kg/gün PG2 veya PG2/sisplatin kombinasyonu ile tedavinin NF-KB ve CD31 proteinlerinin ekspresyonunu hafifçe aşağı regüle ettiğini gösterdik, sırasıyla orta ve güçlü bir şekilde, artan büyüklük sırasına göre CD11b protein ekspresyon seviyesini yukarı düzenlerken (Şekil 5D). Bu sonuçlar ayrıca PG2'nin tümör baskılayıcı etkisini ve sisplatinin antikanser etkisini artırma yeteneğini destekler. 3.6. PG2, CD80+ M1/CD206+ M2 Makrofaj Oranını Yukarı Modüle eder ve CD80+, CD103+ ve CD86+ İşlevsel Olarak Olgunlaşmış Dendritik Hücrelerin Ex Vivo Popülasyonunu Artırır


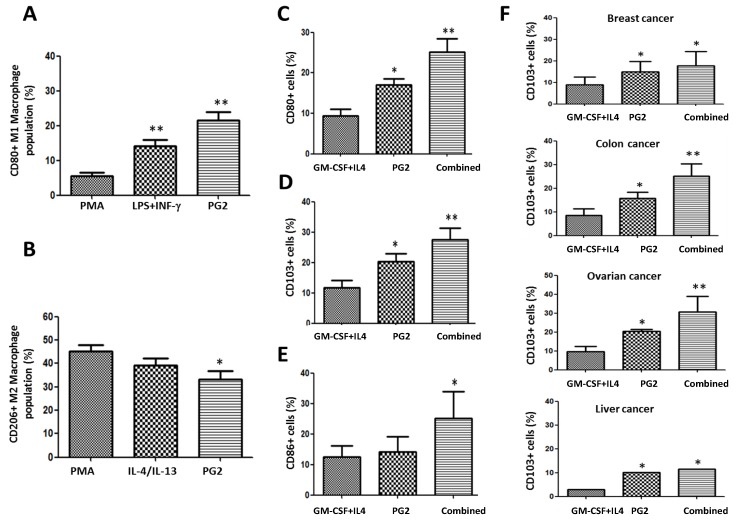
      ELISA ve akış sitometrisi kullanarak PG2'nin immünojenik potansiyelini daha fazla karakterize etmek için, PMA, LPS+INF-y veya PG2'nin M1/M2 makrofaj havuzunun dendritik hücrelere (DC'ler) farklılaşmasını modüle etme yeteneğini karşılaştırmalı olarak analiz ettik ve kanser hastalarında olgunlaşmamış DC'lerin (iDC'ler) olgun DC'lere (mDC'ler) fonksiyonel olgunlaşması. PMA ile karşılaştırıldığında, LPS+INF-y veya PG2'nin CD80+ M1 makrofaj sayısında sırasıyla 2.4 kat ( p < 0.01) ve 3.7 kat ( p < 0.01) artış indüklediğini ve PG2'nin %8.5 daha fazla indüklediğini gözlemledik. CD80+ M1, LPS+INF−γ'den (Şekil 6A). Tersine, PG2, CD206+ M2 makrofaj sayısını PMA ve IL-4/IL-13'e kıyasla sırasıyla %12.1 ( p < 0.05) ve % 6.0 ( p = anlamlı değil) azalttı (Şekil 6B). Granülosit-makrofaj koloni uyarıcı faktör (GM-CSF) ve interlökin-4 (IL-4) monositlerin DC'lere farklılaşmasını tetiklediğinden ve osteoklastlara (OC'ler) farklılaşmayı engellediğinden ve ayrıca makrofaj koloni uyarıcı varlığında DC farklılaşmasını indüklediğinden faktör (M-CSF) ve nükleer faktör kappa-B (RANK) ligandının reseptör aktivatörü [ 32 ], GM-CSF+IL4 ve PG2'nin DC'lere monosit farklılaşması ve DC olgunlaşması üzerindeki etkisini karşılaştırdık. Yalnızca GM-CSF+IL4 ile tedaviye kıyasla, tek başına 16 mg/mL PG2'ye maruz kalmanın CD80+, CD103+ ve CD86+ hücre popülasyonunu %7 ( p < 0.05), %8 ( p < 0.05) oranında önemli ölçüde artırdığını gösterdik. , ve %1 ( p = anlamlı değil), sırasıyla (Şekil 6C,D,E), tek başına GM-CSF+IL4 ile karşılaştırıldığında, GM-CSF+IL4+PG2 daha fazla CD80+ (%16, p < 0.01), CD103+ (%15, p < 0.01) ve CD86+ (13 %, p < 0.05) hücreler (Şekil 6C,D,E). Bu veriler, en azından kısmen, PG2'nin NSCLC'li hastalarda T hücresi aktivasyonunu, M1'in DC'lere farklılaşmasını ve DC'lerin mDC'lere olgunlaşmasını kolaylaştırdığını gösterir.

      Şekil 6
      PG2, CD80+ M1/CD206+ M2 makrofaj popülasyonunu modüle etti ve kanser hastasının ex vivo periferik kan mononükleer hücrelerinden (PBMC'ler) türetilen CD80+, CD103+ ve CD86+ dendritik hücre popülasyonunu arttırdı. Akış sitometrisi ile gösterildiği gibi , ( A ) CD80+ ve ( B ) CD206+ hücrelerinin oranı üzerinde PMA, LPS+INF-y veya PG2'nin etkisi . PG2'nin NSCLC hastalarının GM-CSF+IL-4 ile tedavi edilen PBMC'lerinden türetilen ( C )CD80+, ( D )CD103+ ve ( E ) CD86+ dendritik hücrelerinin popülasyonu üzerindeki etkisinin grafiksel gösterimi . ( F) Göğüs, kolon, yumurtalık veya karaciğer hastalarının GM-CSF+IL-4 ile tedavi edilen PBMC'lerinden türetilen fonksiyonel CD103+ dendritik hücrelerin sayısı üzerinde PG2'nin etkisinin grafiksel gösterimi. 1: GM-CSF+IL4; 2: GM-CSF+IL4, ardından PG2 tedavisi (16 mg/mL); 3: GM-CSF+IL4, yıkanmış ve ardından PG2 (16 mg/mL) tedavisi; * p < 0.05, ** p < 0.01.

      Bu verilerin 'tekrarlanabilirliğini' ve 'genelleştirilebilirliğini' belirlemek için meme ( n = 4), kolon ( n = 2), yumurtalık ( n = 2), karaciğer ( n = 3), mide ( n = 2) ve beyin (GBM, n = 2) kanserleri. Sonuçlarımız, tek başına veya GM-CSF+IL4 ile kombinasyon halinde PG2'nin ayrıca meme, kolon, yumurtalık, karaciğer, mide ve beyin kanserlerinde fonksiyonel mDC'lerin üretimini arttırdığını gösterdi (Şekil 6F ve Ek Şekil S1 ). Ayrıca, çoğu malignitede PG2 immünojenisitesi ve PG2'nin DC'leri ve makrofajla ilişkili bağışıklık ortamını modüle etme yeteneği ışığında, PG2 ile tedavinin aktivasyon durumunu ve T hücrelerinin türünü ne ölçüde etkileyeceğini daha fazla araştırdık. tümör nişi. Hastadan türetilen tümör örneklerinden ayrışmış hücre süspansiyonlarının akış sitometrisi analizimizin sonuçları, 16 mg/kg PG2'nin CD45+ lökositler/beyaz kan hücreleri (WBC'ler) popülasyonunu önemli ölçüde arttırdığını gösterdi (3.02 kat, p < 0.001), ki bu tesadüfen görünüyor CD45+CD8+ T hücrelerinin %9.4'lük önemli bir genişlemesinden dolayıdır ( p< 0.01), PG2 ile muamele edilmiş tümör numunelerindeki CD4+ T hücrelerinin sayısında, muamele edilmemiş muadillerine kıyasla görünüşte önemli bir değişiklik olmadan ( Ek Şekil S2 ).

      Git: 4. Tartışma


      PG2'nin in vivo inflamasyon [ 33 ] ve diyabet [ 34 ] modellerinde güçlü bir şekilde bağışıklığı modüle ettiğinin belgelendirilmesini doğrulayan son çalışmalarımız, PG2'nin kansere bağlı yorgunluğu ve diğer kanser semptom kümelerini iyileştirdiğini ve aynı zamanda yaşam kalitesini (QoL) iyileştirdiğini göstermiştir. hastaların inflamatuar kaskadının modülasyonu yoluyla metastatik hastalığı olan hastaların [ 23 , 24 ]]; bununla birlikte, altta yatan moleküler veya hücresel mekanizmalar nispeten belirsizliğini koruyor. PG2'nin, interlökin (IL)-10, dönüştürücü büyüme faktörü (TGF)-β ve 5' adenosin monofosfat- gibi anti-inflamatuar sitokinlerin ekspresyonunu artırma yeteneği ile gösterildiği gibi, anti-inflamatuar potansiyeller sergilediği bilinirken, aktive protein kinaz (AMPK) ve ayrıca bir AMPK-'de IL-1β, indüklenebilir nitrik oksit sentaz (iNOS), monosit kemoatraktan protein (MCP)-1, IL-6 ve CD11c dahil proinflamatuar sitokinlerin ekspresyonunu inhibe eder. bağımlı şekilde [ 35], PG2'nin tümör nekroz faktörü (TNF)-α, granülosit-makrofaj koloni uyarıcı faktör (GM-CSF), NF- gibi proinflamatuar sitokinlerin seviyesini artırarak inflamatuar süreci destekleyebileceği de öne sürülmüştür. κB ve nitrik oksit (NO) üretimi [ 36 ]. Bu tür çelişkili bulgular, PG2 fonksiyonlarının çeşitliliğini ortaya koymaktadır ve mevcut çalışmamız, PG2'nin makrofaj modülatör aktivitedeki rolünü daha net bir şekilde açıklamayı amaçlamıştır. Bu çalışmada, MDM deneysel modelini kullanarak, sırasıyla tip I sitokinler IFN-y ve LPS'ye veya tip II sitokinler IL-4 ve IL-13'e maruz bırakarak M1- ve M2-polarize makrofajları indükledik (Şekil 1). Makrofajların farklı inflamatuar ipuçlarına bu farklı tepkisi, makrofaj polarizasyonunun moleküler belirleyicileri hakkındaki çağdaş bilgilerle tutarlıdır [ 18 ] ve veri tekrarlanabilirliği için yer açar.

      İmmün temelli antikanser tedavisi için immün modüle edici potansiyelin manipüle edilmesinin olası terapötik yararına dair tahakkuk eden göstergelere uygun olarak, ilk kez ve bildiğimiz kadarıyla, LPS/IFN-y stimülasyonu, PG2 dozuna benzer olduğunu gösterdik. IL-4/IL-13 ile indüklenen M2 polarizasyonunu aşağı doğru düzenlerken M1 polarizasyonunu bağımlı olarak artırır (şekil 2veFigür 3). PG2'nin tümöral M1/M2 polarizasyonunu M1 polarizasyonunun tercihli artışı ile modüle etme yeteneği, M1 makrofajlarının tümörijenisiteyi baskıladığını, kanser hücrelerinin canlılığını ve proliferasyonunu azalttığını ve kanser duyarlılığını arttırdığını gösteren mevcut deneysel ve klinik kanıtlar göz önüne alındığında klinik açıdan önemlidir. hücreleri kemoterapiye [ 37 , 38 ]. Ek olarak, konak tarafından üretilen histidin açısından zengin glikoprotein (HRG) veya fosfolipaz D4 (PLD4) kullanılmasına bakılmaksızın, diğer iki çalışma da etkili bir antikanser terapötik aracı olarak M1 polarizasyonunun potansiyel faydasını ima etmiştir [ 39 , 40 ]]. Bu nedenle, PG2 ile indüklenen M2 MDM'lerin tükenmesi, NSCLC'li hastalar için immün temelli antikanser tedavisinde potansiyel yeni bir modalite oluşturur.

      Ayrıca, inflamatuar kaskadın hücresel ve biyokimyasal bileşenleri arasındaki yaygın olarak bilinen iyi örülmüş etkileşimle tutarlı olarak [ 17 , 27 , 41 ], tükenmiş bir M2 havuzu pahasına belgelenmiş M1 polarizasyonu artışı ile eş zamanlı olarak, PG2 olduğunu da gösterdik. anti-inflamatuar sitokinlerin tümör teşvik edici etkilerini belirgin şekilde bastırır ve M2 ile koşullandırılmış ortam tarafından indüklenen NSCLC kök hücre benzeri fenotipleri inhibe eder (Figür 3veŞekil 4). Pro-inflamatuar sitokin IL-6, özellikle çeşitli malignite türlerinde yapısal olarak aktive olan sinyal transdüseri ve transkripsiyon aktivatörü (STAT)-3 ile etkileşime girdiği ve aktive ettiği için akciğer kanseri biyolojisi, patolojisi ve tedavisinde önemlidir. [ 41 ]. Aslında, IL-6/STAT3 sinyalinin, siklin D1 indüksiyonunu pozitif olarak modüle ederek kanserli hücre proliferasyonunu, göçünü ve hastalık ilerlemesini desteklerken akciğer kanseri başlangıcını baskıladığı gösterilmiştir [ 41 ]. Bu nedenle, IL-6 ve IL-10'un PG2 kaynaklı aşağı regülasyonunun, TME ve sitokin ortamına bağlı olarak, PG2'nin NSCLC hücreleri üzerinde sadece bir tümör öldürücü değil, aynı zamanda tümöristatik etkiler gösterdiğini öne sürdüğünü varsayıyoruz.

      Ayrıca, PG2'nin M2 ile koşullandırılmış ortam tarafından indüklenen NSCLC kök hücre benzeri fenotiplerin inhibisyonunu ortaya çıkardığını gösteren verilerimiz (Şekil 4ve Ek Şekil S3 ), CSC'lerin sınırsız kendi kendini yenileme potansiyeli, tümör başlangıcını ve hastalığın ilerlemesini sağlama konusunda gelişmiş yetenek ve ayrıca tedavi başarısızlığı ve hastalık nüksü konusunda iyi belgelenmiş suç ortaklığı sergilediği düşünüldüğünde terapötik olarak alakalıdır [ 16 , 27 , 36 , 42 ] . Tümör nişinin pasif sakinleri olmanın ötesinde, TAM'ler/MDM'ler, CSC'nin hayatta kalmasını, sürdürülmesini, kendini yenilemesini, hareketliliğini ve tümör oluşumunu artıran otokrin ve parakrin sinyalleri indükler [ 27 ]]. Ek olarak, CSC benzeri fenotipin edinilmesi ve sürdürülmesi ile işlevsel olarak ilgili olduğu gösterilen, TAM aracılı epitelyal-mezenkimal geçişin (EMT) indüksiyonu, TAM'lerin metastatik bir fenotipin elde edilmesinde kritik rolünü önermektedir. CSC'ler [ 42 ]. Bu, potansiyel bir CSC hedefli farmakolojik ajan olarak PG2'nin terapötik ilişkisini ve KHDAK'li hastalar için etkili bir antikanser terapötik stratejisinin varsayılan bileşenini vurgular.

      Ayrıca, PG2'nin singeneik C57BL/6 farelerinde tümörijenisiteyi ve metastazı baskıladığını ve inflamasyonla ilişkili makrofaj aktivitesini ve anjiyogenezi modüle ederek in vivo sisplatin antikanser etkisini güçlendirdiğini gösterdik.Şekil 5). Geniş bir malignite yelpazesinde güçlü bir antikanser ajanı olarak lanse edilmesine rağmen, sisplatinin terapötik faydası, kanserli hücrelerin sisplatine maruz kaldıklarında doğuştan gelen veya kazanılmış direnci ile önemli ölçüde sınırlıdır. Sonuçlarımız, azalmış sisplatin etkinliği veya 'sisplatin direnci' ile NF-κB aktivasyonu ve/veya anormal ekspresyon arasında ilişki kuran raporlarla uyumludur [ 43 ]. Kuang et al. [ 43], sisplatine duyarlı hücrelere kıyasla sisplatine dirençli nazofaringeal karsinom hücrelerinde anti-apoptozis proteinlerinin yukarı regüle edilmiş ekspresyonunun ve zayıflatılmış hücre ölümünün yansıtıldığı gibi NF-κB'nin aktivasyonunun sisplatin direnci için gerekli olduğunu göstermiştir. sisplatinin PG2 gibi bir NF-κB inhibitörü ile birleştirilmesi, sisplatinin terapötik etkinliğinin arttırılmasına yardımcı olabilir; bu nedenle, verilerimizin önemi, PG2'nin NF-KB'nin nükleer birikimini baskıladığını ve sisplatinin antikanser etkisini sinerjistik olarak arttırdığını göstermektedir (Şekil 5).

      Benzer şekilde, CD31/trombosit endotel hücre yapışma molekülü (PECAM)-1, çeşitli malignitelerin patogenezinde yer almıştır. PG2'nin NF-κB ve CD31/PECAM-1'i baskıladığını gösteren bulgularımızı doğrular (Şekil 5), CD31'in lökositlerin transendotelyal göçünü arttırdığına ve NF-κB ekspresyonunu ve/veya aktivitesini yukarı regüle ettiğine dair kanıtlar varken, CD31düşük/boş endotelyal hücreler Fosfatidilinositol 3-kinaz (PI3K)/Akt, mitojenle aktive olan protein kinazın kusurlu indüksiyonunu sergiler. (MAPK)/hücre dışı sinyalle düzenlenen kinaz (ERK) ve Src sinyalinin yanı sıra NF-KB ile indüklenen gen transkripsiyonunun kaybı [ 44 , 45 ]. Bu nedenle, PG2 ile indüklenen CD31 inhibisyonunun tümör neovaskülarizasyonunun azalmasında, vasküler geçirgenliğin değişmesinde, endotel hücrelerinin apoptotik strese karşı artan duyarlılığında ve azaltılmış intratümör lökosit infiltrasyonunda varsayılan klinik etkisi. Aslında bu, PG2 tedavisinin gelişmiş CD11b ekspresyonu ile gösterdiğimiz ilişkilendirmemiz tarafından desteklenmektedir (Şekil 5), özellikle CD11b+ TAM'ler/MDM'ler bir anti-kanser fenotipi gösterdiğinden ve azalmış anjiyogenez, tersine çevrilmiş bağışıklık baskılanması, iyi huylu bir fenotip edinimi, bastırılmış istilacılık ve her zaman hastalık remisyonu ile ilişkilendirdiği için [ 30 , 46 , 47 ].

      Son olarak, ex vivo çalışmalarda, polimikrobiyal sepsisli farelerde T hücrelerinin fonksiyonel durumunun modülasyonu ve polarizasyonunda PG2'nin önceden gösterilen rolüyle tutarlı olarak [ 33 ], bilgimiz dahilinde ilk kez şunu gösterdik: PG2'nin CD80+ M1/CD206+ M2 makrofaj havuzunu modüle ettiğini ve farklı kanser türlerine sahip hastaların PBMC'lerinden türetilen fonksiyonel CD80+CD103+CD86+ mDC'lerin popülasyonunu arttırdığını (Şekil 6). Bu, doğal adjuvanlar ve profesyonel antijen sunan hücreler (APC'ler) olarak DC'ler, T hücre bazlı antikanser tepkisini uyarmak için DC tedavisinin kullanılmasıyla gösterildiği gibi, hayati bir bağışıklıkla ilişkili antikanser rolü oynadığından, bu özellikle klinik açıdan önemlidir [ 7 ].], özellikle immün uyarıcı potansiyele sahip antijenleri çapraz sunma kabiliyeti ile, eksojen antijenlerin MHC sınıf I aracılı MHC sınıf II sunumunu geliştirir ve antikanser immün yanıtları için CD8+ T hücrelerinin doğrudan uyarılmasını sağlar. Bu arada, tüm mDC'lerin antikanser potansiyeli olan immünojenik olmadığı göz önüne alındığında, PG2'nin sistemik fonksiyonel CD80+CD103+CD86+ havuzunu artırdığını gösteren verilerimiz, CD80, CD83, CD86 ve CD103'ün biyobelirteçler olarak bildirildiği gibi mDC'lerin de terapötik önemi vardır. gelişmiş antikanser potansiyeli olan fonksiyonel olarak olgunlaşmış DC'lerin [ 48 , 49 ].

      Git: 5. Sonuçlar


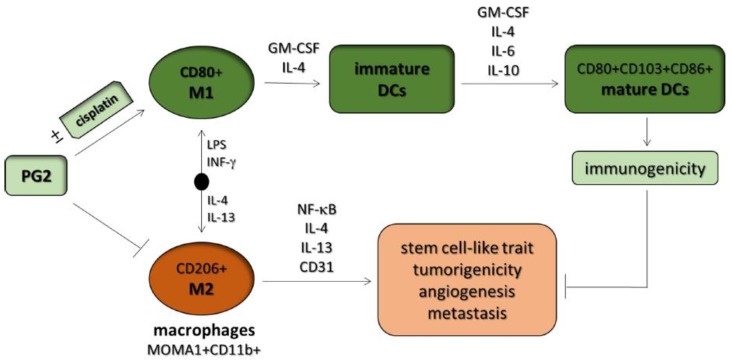
      Birlikte ele alındığında, bu sonuçlar, grafik özette gösterildiği gibi göstermektedir.Şekil 7PG2'nin tümöral M1/M2 makrofaj polarizasyonunun etkili bir modülatörü ve DC olgunlaşmasının güçlü bir aktivatörü olarak ilk kez yeni rolü. Bu sonuçlar, gözlemlenen makrofaj aracılı, PG2 kaynaklı, bağışıklık temelli antikanser ve kemoterapiyi güçlendiren aktivite hakkında bazı mekanik bilgiler sağlar. Dolayısıyla bu çalışma, NSCLC'li hastalar için alternatif kanser immünoterapisi veya idame tedavisi olarak PG2'nin rolünün daha fazla araştırılması için temel oluşturmaktadır.

      Şekil 7
      Grafik soyut. Astragalus polisakkariti (PG2), makrofajların fenotipik polarizasyonunu, dendritik hücrelerin fonksiyonel olgunlaşmasını ve antikanser tedavisi için T hücresi aracılı bağışıklık tepkilerini geliştirir. DC'ler: dendritik hücreler, GM-CSF: granülosit-makrofaj koloni uyarıcı faktör.

      Git: Teşekkür


      Yazarlar, teknik yardımları için laboratuvar asistanlarına (Çeviri Araştırma Laboratuvarı, Tıbbi Araştırma ve Eğitim Departmanı, Taipei Tıp Üniversitesi-Shuang Ho Hastanesi) teşekkür eder. PhytoHealth'ten (PhytoHealth Corporation, Taipei, Tayvan) elde edilen 250 ve 500 mg PG2 liyofilize toz flakonları vardı, araştırma için 10 mL normal tuzlu su solüsyonunda yeniden düzenlendi ve 490 mL tuzlu su solüsyonunda seyreltildi.

      Git: Kısaltmalar


      5' adenosin monofosfatla aktive olan protein kinaz (AMPK); dimetil sülfoksit (DMSO); enzime bağlı immünosorbent deneyi (ELISA); granülosit-makrofaj koloni uyarıcı faktör (GM-CSF); lipopolisakarit (LPS); nitrik oksit (NO); Astragalus polisakarit (PG2); antijen sunan hücreler (APC'ler); kanser hücresi kültür ortamı (CCCM); dendritik hücreler (DC'ler); küçük hücreli olmayan akciğer kanseri (KHDAK); olgunlaşmamış DC'ler (iDC'ler); interferon-y (IFN-y); periferik kan mononükleer hücreleri (PBMC'ler); programlanmış hücre ölümü proteini 1 (PD-1); tümörle ilişkili makrofajlar (TAM'ler); Ücret benzeri alıcı (TLR); tümör nekroz faktörü-a (TNF-a); tümörle ilişkili dendritik hücreler (TADC'ler); sitotoksik T lenfositleri (CTL); tümör mikroçevresi (TME).

      Git: Ek Malzemeler

      Ek veri dosyası için buraya tıklayın. (1,3 milyon, pdf)
      Aşağıdakiler https://www.mdpi.com/2072-6643/11/10/2264/s1 adresinde çevrimiçi olarak mevcuttur , Şekil S1: PG2, farklı kanser hastalarının PBMC'lerinden CD80+ M1makrofaj türevli DC'lerin üretimini artırır. , Şekil S2: PG2 tedavisi, tümör infiltre eden CD8+ T hücre popülasyonunda önemli bir artışa neden olur. Şekil S3: PG2, M2/H1229 ortak kültür sisteminden türetilen tümör kürelerinin yaşayabilirliğini bastırdı.

      Git: Yazar Katkıları


      OAB ve K.-TK—çalışma tasarımı, deneysel tasarım, veri toplama ve harmanlama, el yazması yazma; OAB—çalışma tasarımı, deneysel tasarım, veri harmanlama ve yorumlama, el yazması yazma, revizyon; C.-HW, W.-CH, J.-TT ve K.-YL—deneysel tasarım ve veri toplama; ATHW—hayvan deneyleri; C.-TY, L.-SW—deneysel tasarım, reaktiflerin sağlanması, diğer deney malzemeleri ve altyapısı, idari gözetim; tüm yazarlar makalenin son halini okumuş ve onaylamıştır.

      Git: Finansman


      Bu çalışma, Tayvan Ulusal Bilim Konseyi'nden Wen-Chien Huang'a (105-2314-B-195-016-MY2 ve MOST108-2314-B195-019), MacKay Memorial Hastanesi Araştırma Programına (MMH-105) verilen hibelerle desteklenmiştir. -32 ve MMH-107-14) Wen-Chien Huang'a ve Taipei Tıp Üniversitesi—Ulusal Tayvan Bilim ve Teknoloji Üniversitesi Ortak Araştırma Programı'ndan (TMU-NTUST-103-03) Chi-Tai Yeh'e hibe.

      Git: Çıkar çatışmaları


      Yazarlar, potansiyel bir çıkar çatışması olmadığını beyan eder.

      Git: Veri ve Materyallerin Kullanılabilirliği


      Mevcut çalışmada kullanılan ve analiz edilen veri kümeleri, makul taleplere yanıt olarak ilgili yazarlardan temin edilebilir.

      Git: Referanslar

      1. Siegel RL, Miller KD, Jemal A. Kanser istatistikleri, 2017. CA Cancer J. Clin. 2017; 67 :7–30. doi: 10.3322/caac.21387. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      2. Mok T., Yang JJ, Lam KC EGFR duyarlılaştırıcı mutasyonları olan hastaları tedavi etmek: Birinci basamak mı ikinci basamak mı—Fark var mı? J. Clin. Onkol. 2013; 31 :1081–1088. doi: 10.1200/JCO.2012.43.0652. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      3. Brahmer J., Reckamp KL, Baas P., Crinò L., Eberhardt WE, Poddubskaya E., Antonia S., Pluzanski A., Vokes EE, Holgado E., et al. Gelişmiş Skuamöz Hücreli Küçük Hücreli Dışı Akciğer Kanserinde Nivolumab ve Dosetaksel. N. İngilizce J. Med. 2015; 373 :123–135. doi: 10.1056/NEJMoa1504627. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      4. Borghaei H., Paz-Ares L., Horn L., Spigel DR, Steins M., Ready NE, Chow LQ, Vokes EE, Felip E., Holgado E., et al. Gelişmiş Skuamöz Hücreli Olmayan Küçük Hücreli Olmayan Akciğer Kanserinde Nivolumab ve Dosetaksel. N. İngilizce J. Med. 2015; 373 :1627-1639. doi: 10.1056/NEJMoa1507643. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      5. Reck M., Rodríguez-Abreu D., Robinson AG, Hui R., Csőszi T., Fülöp A., Gottfried M., Peled N., Tafreshi A., Cuffe S., et al. PD-L1-Pozitif Küçük Hücreli Dışı Akciğer Kanseri için Kemoterapiye Karşı Pembrolizumab. N. İngilizce J. Med. 2016; 375 :1823–1833. doi: 10.1056/NEJMoa1606774. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      6. Haslam A., Prasad V. Kontrol noktası inhibitörü immünoterapi ilaçları için uygun olan ve bunlara yanıt veren kanserli ABD hastalarının yüzdesinin tahmini. JAMA Netw. Açık. 2019; 2 :e192535. doi: 10.1001/jamanetworkopen.2019.2535. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      7. Palucka K., Banchereau J. Dendritik hücreler yoluyla kanser immünoterapisi. Nat. Rev. Kanser. 2012; 12 :265–277. doi: 10.1038/nrc3258. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      8. Wang H., Franco F., Ho PC Kanserlerde Treglerin Metabolik Düzenlemesi: İmmünoterapi Fırsatları. Trendler Kanser. 2017; 3 :583–592. doi: 10.1016/j.trecan.2017.06.005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      9. Curiel TJ, Coukos G., Zou L., Alvarez X., Cheng P., Mottram P., Evdemon-Hogan M., Conejo-Garcia JR, Zhang L., Burow M., et al. Yumurtalık karsinomunda düzenleyici T hücrelerinin spesifik alımı, bağışıklık ayrıcalığını teşvik eder ve sağkalımın azalmasını öngörür. Nat. Med. 2004; 10 :942-949. doi: 10.1038/nm1093. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      10. Kuang DM, Zhao Q., Peng C., Xu J., Zhang JP, Wu C., Zheng L. Hepatoselüler karsinomun peritümöral stromasındaki aktive monositler, PD-L1 yoluyla bağışıklık ayrıcalığını ve hastalık ilerlemesini destekler. J. Uzm. Med. 2009; 206 :1327-1337. doi: 10.1084/jem.20082173. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      11. Finn OJ İmmüno-onkoloji: Kanserde bağışıklık sisteminin işlevini ve işlev bozukluğunu anlamak. Anne. Onkol. 2012; 23 (Ek 8):viii6–viii9. doi: 10.1093/annonc/mds256. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      12. Lin EY, Li JF, Gnatovskiy L., Deng Y., Zhu L., Grzesik DA, Qian H., Xue XN, Pollard JW Makrofajlar, bir fare meme kanseri modelinde anjiyojenik anahtarı düzenler. Kanser Araş. 2006; 66 :11238-11246. doi: 10.1158/0008-5472.CAN-06-1278. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      13. DeNardo DG, Barreto JB, Andreu P., Vasquez L., Tawfik D., Kolhatkar N., Coussens LM CD4(+) T hücreleri, makrofajların protümör özelliklerini artırarak meme karsinomlarının pulmoner metastazını düzenler. Kanser hücresi. 2009; 16 :91–102. doi: 10.1016/j.ccr.2009.06.018. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      14. Gocheva V., Wang HW, Gadea BB, Shree T., Hunter KE, Garfall AL, Berman T., Joyce JA IL-4, kanser büyümesini ve istilasını desteklemek için tümörle ilişkili makrofajlarda katepsin proteaz aktivitesini indükler. Genler Dev. 2010; 24 :241–255. doi: 10.1101/gad.1874010. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      15. Mantovani A., Biswas SK, Galdiero MR, Sica A., Locati M. Doku onarımı ve yeniden şekillenmede makrofaj plastisitesi ve polarizasyon. J. Pathol. 2013; 229 :176–185. doi: 10.1002/path.4133. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      16. Gajewski TF, Schreiber H., Fu YX Tümör mikroçevresinde doğuştan gelen ve adaptif bağışıklık hücreleri. Nat. immünol. 2013; 14 :1014-1022. doi: 10.1038/ni.2703. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      17. Takeya M., Komohara Y. İnsan malignitelerinde tümörle ilişkili makrofajların rolü: Dost mu düşman mı? Patol. Int. 2016; 66 :491–505. doi: 10.1111/pin.12440. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      18. Sica A., Mantovani A. Makrofaj plastisitesi ve polarizasyon: in vivo veritas. J. Clin. Yatırım. 2012; 122 :787–795. doi: 10.1172/JCI59643. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      19. Ohtaki Y., Ishii G., Nagai K., Ashimine S., Kuwata T., Hishida T., Nishimura M., Yoshida J., Takeyoshi I., Ochiai A. CD204 eksprese eden stromal makrofaj, tümör agresifliği ile ilişkilidir. akciğer adenokarsinomunda. J. Thorac. Onkol. 2010; 5 :1507–1515. doi: 10.1097/JTO.0b013e3181eba692. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      20. Cao W., Peters JH, Nieman D., Sharma M., Watson T., Yu J. Makrofaj alt tipi, özofagus adenokarsinomunda lenf düğümü metastazını tahmin eder ve in vitro kanser hücresi istilasını destekler. Br. J. Kanser. 2015; 113 :738–746. doi: 10.1038/bjc.2015.292. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      21. Feng Z., Wang Z., Yang M., Zhou L., Bao Y. Polisakkaropeptid, MyD88'e bağlı sinyal yolu yoluyla immün düzenleyici etkiler uygular. Int. J. Biol. Makromol. 2016; 82 :201–217. doi: 10.1016/j.ijbiomac.2015.11.002. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      22. Wang J., Dong B., Tan Y., Yu S., Bao YX Meme kanseri hastalarından alınan PBMC'lerde TLR4-TIRAP/MAL-MyD88 sinyal yolu yoluyla polisakkaropeptidin immünomodülasyonu üzerine bir çalışma. İmmünofarmakol. immünotoksikol. 2013; 35 :497-504. doi: 10.3109/08923973.2013.805764. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      23. Wang CH, Lin CY, Chen JS, Ho CL, Rau KM, Tsai JT, Chang CS, Yeh SP, Cheng CF, Lai YL Karnofsky Astragalus Polisakkaritleri ile Kanser İlişkili Yorgunluk Tedavisi için Öngörü Faktörü Olarak Performans Durumu (PG2) Enjeksiyon—Çift Kör, Çok Merkezli, Randomize Faz IV Çalışması. Kanserler. 2019; 11 :128. doi: 10.3390/cancers11020128. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      24. Huang WC, Kuo KT, Bamodu OA, Lin YK, Wang CH, Lee KY, Wang LS, Yeh CT, Tsai JT Astragalus polisakkariti (PG2) Kanser Belirti Kümelerini İyileştirir ve Metastatik Hastalığı Olan Hastalarda Yaşam Kalitesini İyileştirir , İnflamatuar Kaskadın Modülasyonu yoluyla. Kanserler. 2019; 11 :1054. doi: 10.3390/kanserler11081054. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      25. Liu QY, Yao YM, Zhang SW, Sheng ZY Astragalus polisakkaritleri, in vitro olarak CD11c(yüksek)CD45RB(düşük) DC'ler yoluyla T hücresi aracılı bağışıklığı düzenler. J. Etnofarmakol. 2011; 136 :457-464. doi: 10.1016/j.jep.2010.06.041. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      26. Ulusal Araştırma Konseyi (ABD) Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzunun Güncellenmesi Komitesi. Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu. 8. baskı. Ulusal Akademiler Basını; Washington, DC, ABD: 2011. Ulusal Akademiler Koleksiyonu: Ulusal Sağlık Enstitüleri tarafından finanse edilen raporlar. [ Google Akademik ]
      27. Sainz B., Carron E., Vallespinós M., Machado HL, Machado HL Kanser Kök Hücreleri ve Makrofajlar: Tümör Biyolojisi ve Terapötik Stratejilerdeki Etkiler. Medyat. iltihap 2016; 2016 :9012369. doi: 10.1155/2016/9012369. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      28. Reck M., Heigener DF, Mok T., Soria JC, Rabe KF Küçük hücreli dışı akciğer kanseri yönetimi: Son gelişmeler. Lancet. 2013; 382 :709–719. doi: 10.1016/S0140-6736(13)61502-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      29. Fennell DA, Summers Y., Cadranel J., Benepal T., Christoph DC, Lal R., Das M., Maxwell F., Visseren-Grul C., Modern çağda Ferry D. Cisplatin: The omurgasının omurgası küçük hücreli dışı akciğer kanseri için birinci basamak kemoterapi. Kanser Tedavisi. Rev. 2016; 44 :42–50. doi: 10.1016/j.ctrv.2016.01.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      30. Shigdar S., Li Y., Bhattacharya S., O'Connor M., Pu C., Lin J., Wang T., Xiang D., Kong L., Wei MQ, et al. Enflamasyon ve kanser kök hücreleri. Kanser Let. 2014; 345 :271–278. doi: 10.1016/j.canlet.2013.07.031. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      31. Schmid MC, Khan SQ, Kaneda MM, Pathria P., Shepard R., Louis TL, Anand S., Woo G., Leem C., Faridi MH, et al. Integrin CD11b aktivasyonu, anti-tümör doğuştan gelen bağışıklığı harekete geçirir. Nat. Komün. 2018; 9 :5379. doi: 10.1038/s41467-018-07387-4. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      32. Hiasa M., Abe M., Nakano A., Oda A., Amou H., Kido S., Takeuchi K., Kagawa K., Yata K., Hashimoto T., et al. GM-CSF ve IL-4, dendritik hücre farklılaşmasını indükler ve TNF-alfa dönüştürücü enzim (TACE) Kanının yukarı regülasyonu yoluyla M-CSF reseptör dökülmesi yoluyla osteoklastogenezi bozar . 2009; 114 :4517–4526. doi: 10.1182/kan-2009-04-215020. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      33. Hou YC, Wu JM, Wang MY, Wu MH, Chen KY, Yeh SL, Lin MT Astragalus Polisakkaritlerinin Polimikrobiyal Sepsisli Farelerde T-Hücre Polarizasyonu Üzerinde Modülatör Etkileri. Medyat. iltihap 2015; 2015 :826319. doi: 10.1155/2015/826319. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      34. Li RJ, Qiu SD, Chen HX, Tian H., Wang HX Tip 1 diyabetik farelerde Astragalus polisakkaritinin immünoterapötik etkileri. Biol. Eczacılık Boğa. 2007; 30 :470–476. doi: 10.1248/bpb.30.470. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      35. Lu J., Chen X., Zhang Y., Xu J., Zhang L., Li Z., Liu W., Ouyang J., Han S., He X. Astragalus polisakkarit, aşağıdakilere bağlı olarak anti-inflamatuar etkilere neden olur. Palmitat ile muamele edilmiş RAW264.7 hücrelerinde AMPK aktivitesi. Int. J. Mol. Med. 2013; 31 :1463–1470. doi: 10.3892/ijmm.2013.1335. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      36. Zhao LH, Ma ZX, Zhu J., Yu XH, Weng DP Makrofaj uyarıcısı olarak Astragalus radix'ten polisakkaritin karakterizasyonu. Hücre İmmünol. 2011; 271 :329–334. doi: 10.1016/j.cellimm.2011.07.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      37. Ostuni R., Kratochvill F., Murray PJ, Natoli G. Makrofajlar ve kanser: Mekanizmalardan terapötik uygulamalara. Trendler İmmünol. 2015; 36 :229–239. doi: 10.1016/j.it.2015.02.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      38. Yuan A., Hsiao YJ, Chen HY, Chen HW, Ho CC, Chen YY, Liu YC, Hong TH, Yu SL, Chen JJ, et al. M1 ve M2 Makrofaj Alt Tiplerinin Akciğer Kanseri Progresyonuna Zıt Etkileri. bilim 2015 ; 5 :14273. doi: 10.1038/srep14273. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      39. Rolny C., Mazzone M., Tugues S., Laoui D., Johansson I., Coulon C., Squadrito ML, Segura I., Li X., Knevels E., et al. HRG, Makrofaj Polarizasyonunu ve PlGF'nin Aşağı Regülasyonu Yoluyla Damar Normalizasyonunu İndükleyerek Tümör Büyümesini ve Metastazı Engeller. Kanser hücresi. 2011; 19 :31-44. doi: 10.1016/j.ccr.2010.11.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      40. Gao L., Zhou Y., Zhou SX, Yu XJ, Xu JM, Zuo L., Luo YH, Li XA PLD4, kolon kanseri hücrelerinde antitümör etkileri gerçekleştirmek için M1 makrofajlarını destekler. Onkol. 2016 ; 37 :408–416. doi: 10.3892/veya.2016.5216. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      41. Qu Z., Sun F., Zhou J., Li L., Shapiro SD, Xiao G. Interleukin-6, Başlamayı Önler, ancak Akciğer Kanserinin İlerlemesini Artırır. Kanser Araş. 2015; 75 :3209–3215. doi: 10.1158/0008-5472.CAN-14-3042. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      42. Fan QM, Jing YY, Yu GF, Kou XR, Ye F., Gao L., Li R., Zhao QD, Yang Y., Lu ZH, et al. Tümörle ilişkili makrofajlar, hepatoselüler karsinomda büyüme faktörü-beta1 kaynaklı epitelyal-mezenkimal geçişi dönüştürerek kanser kök hücre benzeri özellikleri destekler. Kanser Let. 2014; 352 :160–168. doi: 10.1016/j.canlet.2014.05.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      43. Kuang CM, Fu X., Hua YJ, Ye ZH, Li Y., Peng QH, Li YZ, Chen S., Qian CN, Huang W., et al. BST2, nazofarenks kanserinde NF-κB sinyali yoluyla sisplatin direnci sağlar. Hücre Ölümü Dis. 2017; 8 :e2874. doi: 10.1038/cddis.2017.271. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      44. Privratsky JR, Tourdot BE, Newman DK, Newman PJ Trombosit Endotelyal Hücre Yapışma Molekülünün Anti-İnflamatuvar Eylemleri-1 Endotel Hücresi NF-kB Düzenlemesini İçermez. J. İmmünol. 2010; 184 :3157–3163. doi: 10.4049/jimmunol.0901944. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      45. Privratsky JR, Newman PJ PECAM-1: Endotelyal birleşme bütünlüğünün düzenleyicisi. Hücre Dokusu Arş. 2014; 355 :607-619. doi: 10.1007/s00441-013-1779-3. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      46. ​​Davies LC, Jenkins SJ, Allen JE, Taylor PR Dokuda yerleşik makrofajlar. Nat. immünol. 2013; 14 :986–995. doi: 10.1038/ni.2705. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      47. Hagemann T., Biswas SK, Lawrence T., Sica A., Lewis CE Tümörlerde makrofaj fonksiyonunun düzenlenmesi: NF-KB'nin çok yönlü rolü. Kan. 2009; 113 :3139–3146. doi: 10.1182/kan-2008-12-172825. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      48. Lichtenegger FS, Rothe M., Schnorfeil FM, Deiser K., Krupka C., Augsberger C., Schlüter M., Neitz J., Subklewe M. Antijen Tarafından T Hücre Aktivasyonunu Geliştirmek için LAG-3 ve PD-1'i Hedefleme -Sunum Hücreleri. Ön. immünol. 2018; 9 :385. doi: 10.3389/fimmu.2018.00385. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      49. Han TH, Jin P., Ren JQ, Slezak S., Marincola FM, Stroncek DF Lipopolisakkarit ve interferon-gama içeren 3 klinik dendritik hücre olgunlaşma protokolünün değerlendirilmesi. J. Bağışıklık. 2009; 32 :399–407. doi: 10.1097/CJI.0b013e31819e1773. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        HÜCRE Yenilenmesi için Antioksidan ve Anti Aging Geven Ekstraktı DNA ve RNA Yeniler ve GENÇLEŞTİRİR


        Kronik Lenfositik ve Akut Myeloblastik Lösemili Hastalarda Telomeraz Enzim Aktivitesi Tayininin Önemi; İlk Sonuçlarımız

        Importance of The Detection of Telomerase Activity in The Patıents with Chronic Lymphocytic and Acute Myeloblastic Leukemia; Our First Results

        ÖZET: Ökaryotik lineer kromozomların uçlarında yer alan ve tekrarlayan DNA dizileri ile özel proteinlerden oluşan telomerler, kromozom uçlarını yıkıma karşı korurlar. Telomer boyu değişimi, telomer proteinleri ve telomeraz enzim kompleksi tarafından kontrol edilir. Telomeraz aktivitesi, fetal ve ergin testisler, fetal ovaryum, tamir gören dokuların çoğalan hücreleri, hematopoietik kök hücreleri, lenfositler, saç folikülleri ve barsak kripta hücrelerinde tespit edilmiştir. Bununla birlikte en sık olarak malignansilerin %85’inde (örneğin; hematolojik malignansiler) yüksek telomeraz aktivitesi belirlenmiştir. Bu nedenle telomeraz aktivitesinin, kanser teşhisinde önemli bir gösterge olabileceği düşünülmektedir. Çalışmamızda lösemik hücrelerde ve normal lenfositlerde telomeraz aktivitesinin tayini ve kıyaslanması amaçlanmış- tır. Bu nedenle, sırasıyla Rai ve FAB kriterlerine göre yeni tanı 7 kronik lenfositik lösemi (KLL), 7 akut myeloblastik lösemi (AML) hastası ve 7 sağlıklı kişiden elde edilen toplam 21 periferik kan örneğinde telomeraz aktivitesi, TeloTAAGGG Telomerase PCR ELISAPLUS (Roche) kiti kullanılarak tayin edildi. PCR reaksiyonunun doğruluğundan emin olmak için PCR ürünleri poliakrilamid jelde yürü- tüldü ve gümüş boyama yöntemi ile bantlar görünür hale getirildi. KLL’li hastalarda kontrol grubuna göre düşük, AML’li hastalarda ise kontrol grubuna göre yüksek oranda telomeraz aktivitesi belirlendi. Ancak gruplar arasındaki fark, istatistiksel olarak anlamlı değildi. Sonuç olarak; lösemilerin prognozu, evrelendirilmesi, hastalığın remisyonu ve tedaviye verdiği yanıtın takibinde telomeraz aktivite tayininin güvenilir bir gösterge olabilece- ği düşünüldü. [Anahtar Kelimeler: Telomer, telomeraz aktivitesi, kronik lenfositik lösemi (KLL), akut myeloblastik lösemi (AML), TRAP, ELİSA]

        SUMMARY: Telomeres, which are located at the ends of eukaryotic linear chromosomes and are comprised of repetitive DNA sequences with special proteins, protect ends of chromosomes against degradation. Telomere lenght is controlled by telomere proteins and telomerase enzyme complex. Telomerase activity is not detectable in somatic cells except for fetal and adult testes, fetal ovary, proliferative cells from renewal tissues, hematopoietic stem cells, lymphocytes, hair follicles and cryptic cells in the intestine. However high telomerase activity had been detected in %85 of human malignancies (e.g. hematologic malignancies). Thus it has thought that telomerase activity is a important marker in the cancer diagnosis. In our study it had been aimed determination of telomerase activity and comparison in leukemic cells and lymphocytes. Thus telomerase activity was determined by using TeloTAAGGG Telomerase PCR ELISAPLUS (Roche) kit in total 21 peripheral blood samples collected from newly diagnosed patients according to Rai and FAB criteria respectively 7 chronic lymphocytic leukemia (CLL), 7 acute myeloblastic leukemia (AML) patients and 7 healthy persons. To ensure the truth of PCR reaction PCR products were electrophoresed on a polyacrylamide gel and bands were made visible by the method of silver staining. Telomerase activity was low in the CLL patients and high in the AML patients according to control group. But the differences between the groups statistically was not significant. As a result, it was thought that determination of telomerase activity could be significant marker for prognose, remission and therapy of leukemia. [Key words: Telomere, telomerase activity, chronic lymphocytic leukemia (CLL), 7 acute myeloblastic leukemia (AML), TRAP, ELISA]

        GİRİŞ Ökaryotik canlıların lineer kromozomlarının uç- larında bulunan ve tekrarlayan DNA dizileri (örneğin; insanda ve farede TTAGGG) ile proteinlerden meydana gelen telomerler (1,2), kromozomların bütünlü- ğünü korur, kromozom uçlarında ekzonükleaz enzimlerinin etkileri sonucu ortaya çıkabilecek kromozom yıkımını ve uç uca kaynaşmaları engellerler (2,3). İnsanda, normal somatik hücrelerin telomer boyu, her hücre bölünmesinde kısalır (4,5). Bu kısalma, telomer proteinleri ve telomeraz enzimi tarafından kontrol edilir.

        Telomeraz enzimi, protein ve RNA’dan oluşan bir ribonükleoprotein kompleksi olup, kendine ait RNA’sını kalıp olarak kullanarak, telomer DNA’sının uzamasını sağlar (6,7).

        Telomeraz aktivitesi, fetal ve ergin testislerde, fetal ovaryumda, tamir gören dokuların çoğalan hücrelerinde, hematopoietik kök hücrelerde, lenfositlerde, saç foliküllerinde, barsak kripta hücrelerinde ve birçok kanser çeşidinde gösterilmiştir (3,8). Telomeraz aktivitesine sahip bu tip hücrelerde, hücre bölünmesinde meydana gelen telomer kaybı telafi edilerek, hücrenin bölünmeye devam etmesi sağlanır (4,9). Bu şekilde korunan sabit telomer uzunluğunun, hücresel yaşlanmayı engellediği ve kromozom dayanıklılığını sağladığı kabul edilmektedir (2).

        Bilindiği gibi, karsinogenezisin nedeni kontrolsüz hücre bölünmesidir (10,11). Bu bölünmenin ger- çekleşebilmesi için telomer boyunun belirli bir uzunlukta olması gerekir. Bunun için bu tip hücrelerde telomeraz aktivitesinde artış veya reaktivasyon görü- lür (5,12).

        Son yıllarda yapılan çalışmalarda, birçok kanser çeşidinin taranması, telomeraz aktivitesi ile malignensi arasında çok güçlü bir ilişkinin bulundu- ğunu göstermiştir (7,13).


        Yapılan bu çalışmalarda, telomeraz aktivitesi, hematolojik malignensilerin %67-100’ünde, primer akciğer karsinomalarının %80’inde, hepatosellüler karsinomaların %85’inde, gastrik karsinomaların %85’inde, prostat karsinomalarının %78-84’ünde, beyin tümörlerinin %66-94’ünde, meme karsinomalarının %93’ünde ve endometrial karsinomaların %95’inde belirlenmiştir (14,15).


        Bütün bu çalışmalardan elde edilen sonuçlar, telomeraz aktivitesinin, çeşitli insan kanserlerinin erken teşhisi ve hastalığın seyrinde prognostik bir marker olabileceğini düşündürmektedir (4,8). Ayrıca yapılan birçok çalışmada telomeraz aktivitesi inhibisyonunun umut vaat eden bir tedavi şekli olabileceği de ileri sürülmektedir (16,17).

        Biz de, bu çalışmamızda, kronik lenfositik lösemili (KLL) ve akut myeloblastik lösemili (AML) hastalardan ve sağlıklı kişilerden alınan periferik kan mononüklear hücrelerinde telomeraz aktivitesini belirlemeyi ve lösemiyi moleküler açıdan ele alan bilgilere katkıda bulunmayı amaçladık.

        MATERYAL - METOD
        Çalışmamızda Hematoloji Bilim Dalı’ndan temin edilen herhangi bir tedavi almamış, sırasıyla Rai ve FAB kriterlerine göre tanısı konulmuş olan 7 kronik lenfositik lösemi (KLL), 7 akut myeloblastik lösemi (AML) hastası ve 7 sağlıklı kişiden alınan kan örnekleri 2ml’lik EDTA’lı tüplerde toplandı.

        Toplanan kan örneklerinden Ficoll-Histopaque yöntemi (18) ile mononüklear hücreler izole edildi. Elde edilen hücreler, çalışma gününe kadar -800 C’de saklandı.

        Örneklerin toplanması tamamlanınca TeloTAAGGG Telomerase PCR ELİSAPLUS (Roche) kiti kullanılarak hücre ekstraksiyonu, PCR ve hibridizasyon-ELİSA işlemleri yapıldı. Hücre ekstraksiyonunu hazırlamak için her bir örnekten steril tüplere 2x10⁵ hücre alındı ve hücreler lizis solüsyonu ile patlatıldı. Hücre ekstraktları 30 dak. 250C primer uzaması, 5 sn. 940 C telomeraz inaktivasyonu ve 30 sn. 940 C denatürasyon, 30 sn. 500 C annealing, 90 sn. 720 C polimerizasyon (30 döngü), 10 dak. 720 C son uzamadan oluşan PCR işlemine tabi tutuldu. Elde edilen PCR ürünlerine hibridizasyon-ELİSA işlemleri yapıldı ve ELİSA okuyucuda A450nm-A690nm’de okutularak örneklerdeki telomeraz aktivitesi tayin edildi. Yine poliakrilamid jelde yürütülen PCR ürünleri, gü-müş boyama yöntemi ile boyanarak telomeraz enzim aktivitesini gösteren merdiven band görüntüsü (50 bp’lik artan bandlar) yönünden incelendi (Şekil -1). Elde edilen tüm sonuçlar, student t testi ile değerlendirildi.

        BULGULAR
        Yaptığımız bu çalışmada, 7 sağlıklı kişi (kontrol grubu), 7 KLL’li hasta [6 geç evreli (evre III-IV) ve 1 intermediate evreli (evre II)] ve 7 AML’li hasta (1 M1, 2 M2, 2 M3 ve 2 M4 alt gruplarında olan) dan elde edilen periferik kan mononüklear hücrelerinde telomeraz aktivite düzeylerinin incelenmesi sonunda;. KLL’li hastaların telomeraz aktivitesinin (0,0213 ± 0,004), kontrol grubuna göre (0,1744 ± 0,098) daha düşük olmakla birlikte, istatistiksel açıdan anlamlı fark göstermediği belirlendi (p>0,05). Yine AML’li
        hastaların telomeraz aktivitesinin (0,53 ± 0,215), kontrol grubuna göre (0,1744 ± 0,098) yüksek olmasına rağmen, istatistiksel açıdan anlamlı fark göstermediği belirlendi (p>0,05) (Tablo-1).

        TARTIŞMA Telomeraz aktivitesi pek çok normal somatik hücrede tayin edilemezken, hematolojik malignensileri de kapsayan çeşitli kanser türlerinde tayin edilebilmektedir. Bu nedenle telomeraz aktivitesinin karsinogenez sürecinde önemli rol oynadığı düşünülmektedir (19,20).


        Yapılan bazı çalışmalarda, yetişkin sağlıklı kişilerden alınan periferik kan ve kemik iliği mononüklear hücrelerinde telomeraz aktivitesi belirlenmiştir (20,21,22). Ayrıca normal insan T ve B lenfositlerinde çok düşük seviyelerde telomeraz aktivitesinin bulunduğu, ancak bu hücreler in vitro olarak mitojenlerle uyarıldıklarında, telomeraz aktvitesinin arttığı belirtilmektedir (22). Biz de çalışmamızda literatürlerle uyumlu olarak yetişkin sağlıklı kişilerden alınan periferik kan lenfositlerinde telomeraz aktivitesi belirledik. Bu durum, nonspesifik mitojenlere ya da antijenlere maruz kalınca, lenfoblastlara dönüşen dinlenme halindeki lenfositlerin, çoğalabilmesinden kaynaklanmaktadır (22,23).


        Hematopoietik kök hücrelerinin ve antijenik bir uyarı ile çoğalan lenfositlerin, her hücre bölünmesinde meydana gelen telomer kısalmasını engellemek için telomeraz aktivitesine sahip oldukları düşünülmektedir (22). Hematopoietik kök hücrelerde ve lenfositlerde telomeraz aktivitesine rağmen, bu hücrelerde yaşlanmayla birlikte telomerlerin kısaldığı belirtilmektedir (22).


        Telomeraz aktivitesi bu normal hücrelerde muhtemelen bu dokunun rejeneratif potansiyelini sağlamak için korunmaktadır. Bununla birlikte organizma, bir antikanser mekanizma olarak, hematopoietik hücrelerin çoğalma kapasitelerini sınırlamaya ihtiyaç duymaktadır. Çünkü bu hücrelerde telomeraz aktivitesi telomer kısalmasını yavaşlatabilmekte, fakat önleyememektedir (22).


        KLL’li hastalarda telomeraz aktivitesini ölçmeye yönelik yapılan çalışmalarda, erken evre KLL’li hastalarda ortalama telomeraz aktivitesinin normal seviyede hatta kontrol grubundan daha düşük olduğu bulunmuştur. Ancak telomeraz aktivitesinin hastalığın geç evrelerinde 2-4 kat arttığı gösterilmiştir (20,22,24)


        Bunlara karşılık Counter ve arkadaşları tarafından yapılan bir çalışmada, geç evre KLL’li hastalardaki ortalama telomeraz aktivitesinin, kontrol grubundaki ortalama aktiviteden düşük, fakat bu değerlerin birbirine yakın olduğu bildirilmiştir (25).


        Bu çalışmada ayrıca hem erken hem de geç evreli KLL hastaları- nın bazılarında, telomeraz aktivitesinin hiç belirlenemediği de belirtilmiştir (25). Biz de çalışmamızda Counter ve arkadaşlarının çalışmasıyla (25) uyumlu olarak geç evre KLL’li hastalarda telomeraz aktivitesinin kontrol gruba göre istatistiksel olarak önemsiz olmakla birlikte bir miktar dü- şük olduğunu belirledik. Bu durum, Counter ve arkadaşları (25) tarafından ileri sürülen “Reaktivasyon Modeli” ile bağıntılı olarak açıklanabilir. Bu modele göre; başlangıçta progenitor lösemik hücre telomeraz aktivitesine sahip olmayıp, KLL’nin ilerlemesi esnasında lösemik hücrelerin bir kısmında telomeraz reaktivasyonu gerçekleştiğinden toplamda telomeraz aktivitesi düşük bulunabilmektedir. Çalışmamızda KLL’li hastalardaki telomeraz aktivitesinin düşük olmasının nedeni, KLL’deki lösemik lenfositlerin çok yavaş çoğalmalarından ve çoğalan bu hücrelerin bir kısmında gerçekleşen telomeraz reaktivasyonuna bağlı olabileceği düşünülebilir.


        Bunlara karşılık, AML’li hastalarda telomeraz aktivitesini belirlemek için yapılan bazı çalışmalarda, AML’li hastalarda telomeraz aktivitesinin kontrollerden 10-50 kat daha yüksek olduğu belirlenmiştir (20,22).Ayrıca AML’li hastalarda yüksek telomeraz aktivitesinin kötü prognoz ve tedaviye dirençle ilişkili olduğu ileri sürülmektedir (22,26).


        Biz de çalışmamızda AML’li hastalarda telomeraz aktivitesinin kontrole göre yüksek olmakla birlikte istatistiksel olarak bu yüksekliğin önemli olmadığını belirledik. Çalışmamızda AML’li hastalarda telomeraz aktivitesinin kontrol ve KLL’li hastalara göre önemsiz de olsa yüksek olmasının nedeni, AML’li hastalarda lösemik hücrelerin tam olarak olgunlaşmamış olması ve bu olgunlaşmamış hücrelerin aşırı çoğalabilme yeteneklerinden dolayı, telomeraz enzimlerinin aktive olmasına bağlı olabileceği düşünülebilir (27).


        Sonuç olarak; lösemilerin prognozu, evrelendirilmesi, hastalığın remisyonu ve tedaviye verdiği yanıtın takibinde telomeraz aktivite tayininin güvenilir bir gösterge olabileceği düşünüldü.


        KAYNAKLAR
        1. Kanoh J, Ishikawa F. Composition and conservation of the telomeric complex. Cell Mol Life Sci 60(11):2295-302, 2003
        2. Heist EK, Huq F, Hajjar R. Telomerase and the aging heart. Sci Aging Knowledge Environ 14(19):11, 2003
        3. Ferreira MG, Miller KM, Cooper JP. Indecent exposure: when telomeres become uncapped. Mol Cell 13(1):7-18, 2004
        4. Testorelli C. Telomerase and cancer. J Exp Clin Cancer Res 22(2):165-9, 2003
        5. Bibby MC. An introduction to telomeres and telomerase. Mol Biotechnol 24(3):295-301, 2003
        6. Wong JM, Collins K. Telomere maintenance and disease. Lancet 362(9388):983-8, 2003.
        7. Mokbel K. The evolving role of telomerase inhibitors in the treatment of cancer. Curr Med Res Opin 19(6):470-2, 2003.
        8. Hiyama E, Hiyama K. Telomerase as tumor marker. Cancer Lett May 194 (2):221-33, 2003
        9. Incles CM, Schultes CM, Neidle S. Telomerase inhibitors in cancer therapy: current status and future directions. Curr Opin Investig Drugs (6):675-85, 2003.
        10. Alberts B, Johnson A, Lewis J, Raff M, Roberts K, Walter P. Molecular Biology of The Cell. Fourth Edition, Garland Science, New York, 1313-32, 2002.
        11. Harrington L, Mcphail T, Mar V, Zhou W, Oulton R, Bass MB et.al. A mammalian telomerase-associated protein. Science 275: 973-7, 1997.
        12. Blasco MA, Hahn WC. Evolving views of telomerase and cancer. Trends Cell Biol 13 (6):289-94, 2003
        13. Gu J, Fang B. Telomerase promoter-driven cancer gene therapy. Cancer Biol Ther Jul-2(4 Suppl 1):64-70, 2003.
        14. Beltz LA. The ‘other’ telomerase inhibitors: non-Gquadruplex interactive agent, non-antisense, nonreverse transcriptase telomerase inhibitors. Curr Med
        Chem Anti-Canc Agents 2(5):589-603, 2002.
        15. Mu XC, Brien TP, Ross JS, Lowry CV, Mckenna BJ. Telomerase activity in benign and malignant cytologic fluids. Cancer (Cancer Cytopathol) 87:93-9, 1999.
        16. Nguyen B, Elmore LW, Holt SE. Telomerase as a target for cancer immunotherapy. Cancer Biol Ther 2(2):131-6, 2003.
        17. Mego M. Telomerase inhibitors in anticancer therapy: gossypol as a potential telomerase inhibitor. Bratisl Lek Listy 103(10):378-81, 2002.
        18. Boyum A. Separation of leukocytes from blood and bone marrow. Scand. J. Clin. Lab. Invest 21 (Suppl 97):77, 1968. 19. Cong YS, Wright WE, Shay JW. Human telomerase and its regulation. Microbiol Mol Biol Rev 66(3):407- 25, 2002.
        20. Engelhardt M, Mackenzie K, Drullinsky P, Silver RT, Moore MA. Telomerase activity and telomere length in acute and chronic leukemia, pre- and post-ex vivo culture. Cancer Res 60 (3):610-7, 2000.
        21. Trentin L, Ballon G, Ometto L, Perin A, Basso U, Chieco-Bianchi L, Semenzato G, De Rossi A. Telomerase activity in chronic lymphoproliferative disorders of B-cell lineage. Br J Haematol 106(3):662- 8, 1999.
        22. Koutroumba P, Polychronopoulou S, Haidas S. Structure and function of telomeres/telomerase and their role in preleukaemia and haematologic malignancies. Haema 6(1):35-47, 2003.
        23. Çavuşoğlu, H. (trans. ed.). Renkli Fizyoloji Atlası. İstanbul: Nobel Tıp Kitabevleri, 1997.
        24. Trentin L, Ballon G, Ometto L, Perin A, Basso U, Chieco-Bianchi L, Semenzato G, De Rossi A. Telomerase activity in chronic lymphoproliferative disorders of B-cell lineage. Br J Haematol Sep;106(3):662-8, 1999.
        25. Counter CM, Gupta J, Harley CB, Leber B, Bacchetti S. Telomerase activity in normal leukocytes and in hematologic malignancies. Blood 85(9):2315-20,
        1995.
        26. Ohyashiki JH, Sashida G, Tauchi T, Ohyashiki K. Telomeres and telomerase in hematologic neoplasia. Oncogene 21(4):680-7, 2002.
        27. Ohyashiki JH, Ohyashiki K, Iwama H, Hayashi S, Toyama K, Shay JW. Clinical implications of telomerse activity levels in acute leukemia. Clinical
        Cancer Research 3:619-25, 1997
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5

          Türk kitresi, astragalus gummifer

          Çok Yıllık | 0,2-0,6m | 5-8 Aylar Na | Zamak

          Kitre, Targant, Astragalus gummifer
          Kitre zamkı
          Türk kitresi
          Geven otu zamkı

          Familyası; Baklagillerden, Schmettelingsblütler, Fabaceae(Leguminosae)

          Drugları; Kitre: Tragantha
          Geven otunun gövde veya kökünün üzerinden bıçakla özel olarak yapılan çizgilerden akan zamka kitre denir ve kitre başta ilaç yapımında kullanılır.

          Giriş; Özelikle Osmanlılar zamanında önemli ihraç maddesi olarak kul-lanılmıştır. Takriben 10 çeşit kalitede kitre pazarlanmakta idi, fakat bugün maalesef kitre üretimi ve ihracatı % 90 oranında İran tarafından yapılmaktadır. En kaliteli kitrenin elde edildiği geven otu türleri Türkiye'de yetişmesine rağmen, şu anda bu alanda hiç de iyi durumda değiliz. Bunun nedeni de 60-70 yıldır şifalı bitkilere karşı adeta gizli bir el tarafından sürekli olarak uydurulan yoğun propogandadır.
          Geven otunun takriben 500 çeşit türü olup bunlardan 30 çeşidinden kitre elde edilebilmektedir. Kitre elde edilen önemli geven otu türleri:
          Türk kitresi: astragalus gummifer, İran kitresi: astragalus brachycentrus, Irak kitresi: astragalus arabicus, Türkistan kitresi: astragalus membranaceus,
          Anadolu kitresi: astragalus microcephalus, Azeri kitresi: astragalus elymaiticus ve Moğol kitresi: astragalus mongholicus en önemlileridir.
          Türk kitresi olarak bilinen astragalus gummifer en çok bilinen ve tanınan tür iken, Anadolu kitresi olarak bilinen astragalu microcephalus en kaliteli olandır. Türkistan kitresi olarak bilinen astragalus memranaceus çok farklı şekilde kullanılır. Bu türün zamkı elde edilmez. Kökleri kurutulduktan sonra ince ince doğranır ve çayı içilir. Bu nedenle bu farklı bitkiyi ayrıca kısaca sona doru ele alacağız.

          Botanik; Türk kitresinin 30-60 cm boyunda kısmen yükselen kısmen yatay olarak çevresine yayılan ve kümeler halinde topluca yetişen, çok yıllık bir bitkidir. Yaprakları 9-13 çift ve sonda bir tek yapraktan meydana gelen kanat yapraklardır. Yaprakları uzun bir yumurta şeklinde, koyu yeşil renkte 3-10 mm uzunluğunda 2-5 mm genişliğindedir.
          Çiçekleri başak şeklinde yaprak diplerinden çıkan uzun bir sap üzerinde 30-50 çiçekten meydana gelir. Kupa yaprakları çan şeklinde, yeşilimsi sarı 5-8 mm ve taç yaprakları 8-12 mm büyüklüğünde sarı renkli bazen üzerinde kırmızımsı veya morumsu damarlara rastlanır. Tohumları 2-4 mm büyüklüğünde ve oval şekildedir.
          Anadolu kitresi bu türden farklı olarak 50-150 cm boyunda, yaprakları 11-17 adet uzun yumurta veya oval şeklide 5-10 mm uzunluğunda 2-4 mm enindeki yan yapraklardan meydana gelir. Türkiye'nin Orta, Doğu ve Güney doğu bölgelerinde yabani olarak yetişir.

          Yetiştirilmesi; Vatanı Türkiye olan bu iki tür zaten yabani olarak yetiş-mektedir, şayet tohumları mera, çimenlik, yol kenarları, bahçe ve tar-lalara ekildiğinde kendiliğinden oralarda bakım gerek kalmadan yerleşir ve yayılır.

          Hasat zamanı; Mayıs sonu veya Haziran başında bitkinin kökleri açılır, Temmuz ortalarında gövde veya kökle gövde arasında 2-3 yerden bıçakla çizilerek eğri bir yara açılır. Bu çiziklerden dışarı çıkan bitki özü sertleşerek zamk şeklini alır. İlk elde edilen zamk şeffaf renkte ve birinci kalitedir, iki hafta sonra elde edilen zamk sarımsı renkte ve ikinci kali-tedir.

          Birleşiminde; Türk kitresinin birleşimindeki maddeleri şöyle sıralaya-biliriz;% 40 oranında suda çözünebilen Traganthin (molekül ağırlığı> 10.000 dalton) ve suda çözünmeyen fakat aşırı oranda şişme (su toplama) özelliğine sahip olan Bassorin % 60 oranındadır (molekül ağır-lığu> 100.000 dalton). Traganthin ise Traganthasit ve Arabinogalaktan - Protein den oluşur ve de Traganthasit'te % 40 D-Galakturon, % 40 D-Xylozlar, % 10 Fruktozlar, % 10-15 su, % 3 Nişasta ve % 5 Glukozlardan oluşur. Arabinogaktan ise % 70-80 L-Arabinozlar, % 12-15 β-D-Galaktozlar ve % 3 α-D-Galakturanasitten oluşur. Zamk asitli ortamda 10-15 kat, nötr ortamda 40-45 kat ve alkalik ortamda 35-40 oranında şişme (su toplama) özelliğine sahiptir.

          Tesir şekli; Su toplayıcı (kabartıcı, şişirici) özelliğe sahiptir.

          Kullanılması: a-) Üniversite kliniklerinde tedavi denemekleri ve araştırmalar yapılmamıştır. Bu nedenle bugünkü bilgilere göre 2. sınıf bir şifalı bitkidir. Kitre yerine göre daha etkili olan başka bitkiler kullanılmalıdır. Örneğin pekliğe karşı Ravent-, Keten-, Sinameki-, Nane-, Akdiken preparatları veya Gökçek İksiri daha etkilidir.
          b-) Halk arasında hapı veya tozu alındığında su toplayıcı özelliği nedeniyle şişerek ağırlaşır ve bağırsakları harekete geçirir. Bu nedenle peklik giderici ilaçlara katılır ve 2-3 hafta süreyle kullanıldığında aynı keten tohumu gibi etki ettiği görülmüştür. Ayrıca diş pastası, kozmetik, parfüm, boya, tekstil endüstrisinde, ilaç sanayinde hap ve draje yapımında, salatalar için hazırlanan dressing, hardal, puding, pasta, dondurma ve sos yapımında kullanılır.

          Çayı: Kitre zamkının tozu veya granülitinden bir tatlı kaşığı (3 gram) 300-500 ml soğuksu ile içilir.
          Yan tesiri: Bilinen bir yan tesiri yoktur, eğer toz, granülit ve hapını yutulduktan sonra yeterince su içilmezse yemek borusu, mide veya bağırsaklara yapışabilir.


          Telomeraz Aktivitesini Değerlendirmede Kullanılan Yöntemler ve Dayandıkları Esaslar


          I. GİRİŞ
          İnsan kromozomlarının sonu 15 kilobaza kadar uzayabilen basit telomerik tekrar dizilerinden (5’-TTAGGG-3’) oluşur (6). Telomerik baz dizileri hücresel DNA’yı kararlı halde tutar ve onları yeni kombinasyonlardan (end to end fusion) ve enzimatik yıkımlardan korur (7).


          DNA polimerazlar DNA sentezini 5’→3’ doğrultusunda gercekleştirirken başlangıç için bir RNA primerine gereksinim duyarlar. Bu primerin atılmasıyla oluşan boşluk başka bir mekanizmayla yeniden doldurulmazsa, her hücre bölünmesinden sonra bir miktar telomerik kısalma ortaya çıkar. Hücre ve organizma yaşlanmasında, ana nedenin bu telomerik kısalma olduğu ileri sürülmüştür (6). Bu kaybı önlemenin yollarından biri telomeraz enziminin aktivite göstermesidir. Telomeraz bir ribonükleoprotein kompleksidir. Kromozom sonlarına (TTAGGG)n den oluşan hekzomerik tekrarları ekleyerek telomer uzunluğunu kararlı halde tutar. Enzim yapısında telomerik dizilere kalıplık yapacak 159 nükleotidlik bir RNA içerir. Önemli komponentlerinden diğer ikisi ise “reverse” transkriptaz ve Protein I’dir ( 8-10).


          Başlangıçta kullanılan aktivite tayin yöntemlerinde miktar saptaması hemen hemen imkansız olduğundan sonuçlar telomeraz pozitif ve telomeraz negatif olarak verilmiştir. Daha sonra geliştirilen yöntemlerde bu sorun aşılmaya çalışılmış ve miktar saptamada değişik yollar kullanılmıştır.


          II. KULLANILAN YÖNTEMLER
          Telomeraz aktivitesini saptamak amacıyla bir çok yöntem geliştirilmiştir. Bu sayede, daha önce kullanılan geleneksel yöntemin gerektirdiği fazla miktardaki doku ve hücre kullanımı giderilmiştir. Geliştirilen ilk yöntem telomerik tekrarların PCR ile çoğaltılması esasına dayanan TRAP (Telomeric Repeat Amplification Protocol) yöntemidir. Daha sonra geliştirilen bir çok modifikasyon ile TRAP yönteminin klinik uygulamalarda daha hassas ve güvenilir olması amaçlanmıştır.


          1. TRAP (Telomeric Repeat Amplification Protocol)
          Bu yöntem 1994’de Kim ve arkadaşları tarafından tanımlanmıştır (1). Eğer hücre ve dokulardan elde edilen homojenat telomeraz içeriyorsa, ortama konan özel hazırlanmış primerler telomeraz ile uzatılır. Uzama ürünleri (extension product), PCR amplifikasyonunda kalıp; 150 bp’lik myogenin (sıçan) fragmentleri internal standard olarak kullanılır. Ürünler spekroforetik olarak ayrılır. Radyoaktif işaretli primerler kullanılarak ya da radyoaktif işaretli dCTP’ler PCR ortamına eklenerek telomeraz ürünlerinin görüntülenmesi sağlanır. TRAP sonunda görüntü çözümleyici (Image Analyzer) kullanılır. Elde edilen veri, döngü sayısına karşı grafiklenir. Standarda göre değerlendirilir. Bununla birlikte miktar saptaması çok hassas değildir. Aktiviteyi nicel olarak saptamak zor ve güvenilir olmadığından, sonuçlar telomeraz negatif ve pozitif olarak değerlendirilir. Radyoizotoplar istenmiyorsa jel SYBR green I ile boyanır. Yöntemin uygulanışı Şekil 1’de gösterilmiştir.Bu yöntemin kusurları,


          1. Radyoizotopların kullanılması
          2. Zaman alıcı poliakrilamid jel elektroforeze gereksinim olması,
          3. Klinik örneklerden gelen PCR inhibitörlerinin etkilerine açık oluşu,
          4. Miktar saptamada karşılaşılan zorluklar,
          5. İnternal kontrole gereksinim olması,
          6. CX primerde primer-dimer oluşumu olarak sıralanabilir


          TRAP’da karşılaşılan zorlukları aşabilmek ve uygulamayı kolaylaştırmak için zaman içinde değişik kitler üretilmiştir. Bunlar TRAP-eze ve TRAP-eze-Elisa kitleridir.


          TRAP-eze yöntemi
          Oncor firması 1996’da TRAP-eze kitlerini üretmiştir. Bu kitler daha hassas, daha ucuzdur ve daha kısa zamanda uygulanabilir. Bu yöntemde “reverse” primer (RP) TRAP’ daki “reverse” primer CX’in modifiye şeklidir (Sekil 1). Primer-dimer oluşumu azaltılmıştır. Kit 36 bp’lik internal standard içerir (11). Şekil 2’de yöntem gösterilmiştir.


          TRAP-eze-Elisa yöntemi
          1. Telomeraz enzimi biotin işaretli “forward” P1-TS primerinin 3’ ucuna telomerik tekrar dizilerini ekler.
          2. Uzayan ürünler P2 “reverse” primeri kullanılarak PCR sisteminde amplifiye edilir.
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6
            3. PCR ürünleri denatüre edilir ve telomerik tekrar dizileri ile hibridize olabilen digoksigenin (DIG) işaretli spesifik prob ile hibridize edilir. Bu son ürünler streptoavidin kaplı mikrotiter plaklarına biotin işaretli primer aracılığıyla bağlanır.


            4. Plaklara bağlı PCR ürünleri antiDIG-peroksidaz ile kompleks oluşturur.


            5. Son olarak peroksidaz substratı 3,3’,5,5’-tetrametil benzidin (TMB) peroksidaz enzimi tarafından renkli oksidasyon ürünlerine dönüştürülür. Reaksiyon durdurucu çözelti eklenerek renk oluşumu durdurulur. Örneklerin absorbansları 450 nm ve 620 nm’de mikrotiter plak okuyucuda okunur.


            1.a. Floresan-TRAP yöntemi


            Aldous ve Grabill (12) telomeraz aktivitesini saptamak için floresan bir yöntem (F-TRAP) kullanmışlardır. Radyoizotopların kullanımını elimine etmek için flore sans işaretli primerler kullanılmıştır.


            1.b. “Strech-PCR” yöntemi (Stretch-PCR assay)


            1996’da Tatematsu ve arkadaşları TRAP’ı biraz daha geliştirmişlerdir (13). PCR’a dayanan yöntemlerde iki sorun her zaman görülebilir
            1. “Forward” ve “reverse” primerler birbirleriyle etki li biçimde hibridize olarak türlü kombinasyonlar oluşturabilirler çünkü bunlar tekrar eden diziler için hazırlanmıştır. Amplifikasyon sırasında uzama ürün leri yerine bunlar çoğaltılabilir. Burada telomeraz tarafından uzatılmış primer kalıp gibi kullanılmamıştır.

            2. “Reverse” primerler telomerazla uzatılmış tekrar lanan dizilerden herhangi biriyle hibrid yapabilir. Sonuçta kısalmış PCR ürünleri ortaya çıkabilir.


            Bu sorunların üstesinden gelmek için bu yöntemde özel olarak dizayn edilmiş primerler kullanılmıştır.


            1. “Forward” ve “reverse” primerler 3’ uçlarında eşleşmeyen (mismatch) bir baz çifti içerirler. Bu durum primerdimer oluşsa bile uzamayı engeller. Telomeraz enzimi sadece dimer oluşturmayan “forward” primeri uzatır.


            2. Bu primerlerin 5’ uçlarına telomer dizileriyle ilişkisi olmayan ekstra “tag” dizileri ( M13-U, M13-R) eklenir ve böylece amplifikasyonda PCR ürünleri her zaman orijinal boylarını korur. Yöntemin uygulanışı Şekil 3’de gösterilmiştir.


            1.c. PicoGreen yöntemi
            Gelmini ve arkadaşları 1998’de hızlı, miktara bağlı ve nonizotopik bir assay yöntemi geliştirmişlerdir (14). Telomeraz ürününün çoğaltılmasında “stretch-PCR” yöntemi uygulanır. Burada PCR ürünlerine PAGE gibi zaman alıcı işlemler uygulanmaz. Bunun yerine PCR
            ürünleri PicoGreen ile muamele edilir. Yöntem floresan bir boya olan PicoGreen’in seçici olarak çift zincirli DNA’ya bağlanması esasına dayanır. Spektroflorometre ile floresans okunur. DNA konsantrasyonu kontrol DNA ile hazırlanan standart eğrisinden hesaplanır. Telomeraz aktivitesini belirleyen DNA miktarı ise saptanan DNA miktarından negatif kontrolde saptanan DNA’nın çıka rılması ile hesaplanır. RNaz ile muamele edilmiş hücre ya da doku homojenatı negatif kontrol olarak kullanılır.
            Sonuçlar protein miktarı saptanmış her örnek için ng DNA/μg protein olarak verilir.

            1.d. In situ PCR yöntemi
            Ohyashiki ve arkadaşları (15) tümör hücrelerinde telomeraz enziminin varlığını TRAP yönteminin modifikasyonu olan in situ PCR yöntemi ile göstermişlerdir. Böylece hücre düzeyinde telomeraz aktivitesinin araştırılmasına olanak sağlanmıştır


            2. TMA/HPA Yöntemi (Transcription-Mediated Amplification and Hybridization Protection Assay )


            Hirose ve arkadaşları (16) TMA/HPA yöntemini önermişlerdir. Bu yöntemin uygulaması kolay ve hızlıdır; ayrıca klinik örneklerden gelebilecek TRAP inhibitörlerinden çok az etkilenir. Telomeraz ürününün transkripsiyon yoluyla amplifikasyonu hızlı olduğundan ve bir tek kalıptan bir saat içinde milyarlarca RNA amplikonu oluşturulabildiğinden çoğaltmada su banyosu kullanılabilir. Bu yöntem RNA’larla hibridize olmuş ve olmamış probların farklı hidroliz olmaları ve telomeraz tarafından uzatılacak primere promotor eklenmiş olması esasına dayanır.


            Promotor primerle telomerik tekrarların birleşme noktasına komplementer olan akridinyum ester-işaretli problar hazırlanır ve kullanılır. Amplikon ve problar 65 oC’de 20 dak. inkübe edilir ve hidroliz tamponu eklenerek tekrar 10 dak. inkübe edilir ve soğutulur. Luminometre ile kemiluminesans ölçülür. Yöntemin uygulanışı Şekil 4’de gösterilmiştir


            3. “Reverse” Transkripsiyon –PCR Yöntemi (Reverse Transcription-PCR Assay or Taq Man Fluorogenic Detection System)


            Telomeraz kompleksinin aşağıdaki komponentleri klonlandıktan sonra, bu komponentlerin mRNA düzeylerinin saptanması enzim aktivite çalışmalarında yeni bir yaklaşım olmuştur.


            Telomeraz RNA komponenti TERC (hTR), telomeraz “reverse” transkriptaz TERT (TCS1, EST2), telomeraz protein I komponenti TEP1 (TP1).
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7
              Yajima ve arkadaşları (17) hTR’in ifade edilme düzeyini saptamak için RT-PCR yöntemini geliştirmişlerdir. Bu sistemde spesifik PCR ürününün değerlendirilmesinde DNA polimerazın 5’→3’ ekzonükleaz aktivitesinden yararlanılır. Taq Man analiz yöntemi PCR’ı nicel yapar.


              Bu yöntemde hTR için iki primer (“forward” ve “reverse”) ve bir de hibridizasyon probu yer alır. Taq polimeraz PCR’ın uzama evresinde, uzama özelliği olmayan ve iki ucundan işaretli florojenik hibridizasyon problarını keser ve buraya primeri yerleştirir. Bu sırada serbest floresans veren haberciler çıkarılmış olur ve bunlar da anında okunur. Bu işlem için birleştirilmiş PCR ve floresans dedektör kullanılır. Floresansdaki artış sürekli olarak optik monitörden izlenir. Bu yöntemde PCR sonrası hiçbir işlem yapılmaz. Prob 5’ ucundan FAM ya da JOE adları verilen haberci floresan boyalarla, 3’ ucundan ise floresans söndürücü bir boya ile işaretlenir. Prob bütün iken hiçbir sinyal vermez çünkü 3’ ucundaki boya 5’ ucundaki etkiyi yok eder. Prob, Amply Taq DNA tarafından 5’→3’ doğrultusunda kesilerek yerine “forward” primer girer ve primer uzatılır. FAM 517 nm’de, JOE 554 nm’de okunur. Sonuçların hesaplanmasında standart eğriden yararlanılır. Amplifikasyon üç farklı basamakta gerçekleştirilir ( Evre I: 30 dak. 48 °C, “reverse” transkriptaz aktivitesi ; Evre II: 10 dak. 95 °C, RT inaktivasyonu ve Amply Taq Gold aktivasyonu ; Evre III: 15 sn.95 °C ve; 1 dak. 60 °C, 40 PCR döngüsü)


              4. Primerlerin Parçalanmamış İnsan T-Lösemik Hücre Çekirdekleri İçinde Uzatılması Fletcher ve arkadaşları 1999’da primerin parçalanmamış çekirdek içerisinde uzatıldığı bir sistem kullanmışlardır (18). İnsan T-lösemik hücrelerinden izotonik olarak izole edilen çekirdeklerdeki telomeraz aktivitesi çok düşük bir düzey gösterir. Ancak dört kadar TTAGGG telomerik tekrar dizisi ekleyebilir. Telomeraz aktivitesinin doğal ortamında araştırılması, enzim fonksiyonuna yeni bir ışık tutabileceği gibi yeni telomeraz inhibitörlerinin değerlendirilmesi için kullanışlı bir sistem oluşturur.


              III. SONUÇ
              Tanı açısından telomeraz aktivitesinin kliniklerde kullanılabilmesi için çok büyük sayılarda örneklerle çalışılmalı ve kesin miktar veren yöntemler geliştirilmelidir. Eğer TRAP yöntemi kullanılacaksa PicoGreen ile “stretch-PCR” yönteminin uygulanması, RT-PCR yöntemi kullanılacaksa hTERT’in ifade edilme düzeyinin saptanması tercih edilmelidir. Yapılan çalışmalar, hTERT ve telomeraz aktivitesi arasında güçlü bir korelasyonun varlığını göstermiştir.


              Kaynaklar


              1. Kim NW, Piatyszek MA, Powse KR, Harley CB, West MD, Ho PLC, Coviello GM, Wright WE, Weinrich SL, Shay JW (1994). Specific association of human telomerase activity with immortal cells and cancer. Science 266: 2011-2015.
              2. Albanell J, Bosl GJ, Reuter VE, Engelhardt M, Franco S, Moore MA, Dmitrovsky E (1999). Telomerase activity in germ cell cancers and mature teratomas. J Natl Cancer Inst 91(15): 1321-1326.
              3. Meeker AK, Coffey DS (1997). Telomerase: a promising marker of biological immortality of germ, stem, and cancer cells. A review. Biochemistry (Mosc) 62: 1323-1331.
              4. Mu XC, Brien TP, Ross JS, Lowry CV, McKenna BJ (1999). Telomerase activity in benign and malignant cytologic fluids. Cancer 87(2): 93-99.
              5. Yasui W, Yokozaki H, Shimamoto F, Tahara H, Tahara E (1999). Molecular-pathological diagnosis of gastrointestinal tissues and its contribution to cancer histopathology. Pathol Int 49(9): 763-774.
              6. Dahse R, Fiedier W, Ernst G (1997). Telomeres and telomerase: biological and clinical importance. Clin Chem 43: 708-714.
              7. Rhyu M (1995). Telomeres, telomerase, and immortality. J Natl Cancer Inst 87: 884-894.
              8. Feng J, Funk WD, Wang S, Weinrich S, Avilion A, Chiu C, et al. (1995). The RNA component of human telomerase. Science 269: 1236-1241.
              9. Harrington L, McPhail T, Mar V, Zhou W, Oulton R, Program AE, et al. (1997). A mammalian telomerase-associated protein. Science 275: 973-977.
              10. Nakamura TM, Morin GB, Chapman KB, Weinrich SL, Andrews WH; Lıngner J, Harley CB, Cech TR (1997). Telomerase catalytic subunit homolog from fission yeast and human. Science 277: 955-959.
              11. Holt SE, Norton JC, Wright WE, Shay JW (1996). Comparison of the telomeric repeat amplification protocol (TRAP) to the new TRAPeze telomerase detection kit. Methods in Cell Science 18: 237-248.
              12. Aldous WK, Grabill NR (1997). A fluorescent method for detection of telomerase activity. Diagnostic Molecular Pathology 6(2): 102-110.
              13. Tatematsu K, Nakayama J, Danbara M, Shionoya S, Sato H, Omine M, Ishikawa F (1996). A novel quantitative ‘stretch PCR assay’ that detects a dramatic increase in telomerase activity during the progression of myeloid leukemias. Oncogene 13:2265-2274.
              14. Gelmini S, Caldini A, Becherini L, Capaccioli S, Pazzagli M, Orlando C (1998). Rapid, quantitative non-isotopic assay for telomerase activity in human tumors. Clinical Chemistry 44 (10): 2133-2138.
              15. Ohyashiki K, Ohyashiki JH, Nishimaki J, Toyama K, Elbihara Y, Kato H, Wright WE, Shay JW (1997). Cytological detection of telomerase activity using an is situ telomeric repeat amplification protocol assay. Cancer Res 57: 2100-2103.
              16. Hirose M, Hashımoto JA, Tahara H, Ide T, Yoshimura T (1998). New method to measure telomerase activity by transcription-mediated amplification and hybridization protection assay. Clinical Chemeistry 44(12): 2446-2452.
              17. Yajıma T, Yagihashi A, Kameshima H, Kobayashi D, Furuya D, Hirata K, Watanabe N (1998). Quantitative reverse transcriptionPCR assay of the RNA component of human telomerase using the TaqMan fluorogenic detection system. Clinical Chemistry 44(12): 2441-2445.
              18. Fletcher TM, Trevino A, Woynarowski JM (1999). Enzymatic activity of endogenous telomerase associated with intact nuclei from human leukemia CEM cells. Biochem Biophys Res Commun 265(1) 51-56.
              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap


              • #8
                KANSER TANI VE TEDAVİSİNDE DNA’YA YÖNELİK GÜNCEL YAKLAŞIMLAR: TELOMERAZ / TERT


                Özet


                Kromozomların uçlarında tekrarlayan TTAGGG ünitelerinden oluşan telomerik yapılar bulunmaktadır. Her hücresel bölünme ile birlikte telomerik uçlardan bir miktar DNA kaybedilmektedir.Telomeraz, kendi RNA’sını kalıp olarak kullanarak kendini sentezleme yeteneği olan ve heksomerik parçaları [(TTAGGG)n] kromozomal uçlara ekleyerek telomerik DNA’nın uzatılması, kromozomal uçlardaki kaybın dengelemesi ve korunması görevi olan ribonükleoprotein yapıda bir enzimdir.


                Kanser vakalarında, hücrenin telomer uzunluğu ve telomeraz aktivitesi incelendiğinde in vivo ortamda tümör oluşumu ve telomeraz aktivitesinin birbiri ile ilintili olduğu gösterilmiştir. İyi huylu tümörlerde telomeraz aktivitesi yoktur ve telomerleri kısaldıkça erken evrelerine geri dönmektedirler. Daha saldırgan seyreden metastatik tümörlerde ise yüksek telomeraz aktivitesi gösterilmiştir.


                1.Giriş


                Kromozomların uçlarında tekrarlayan TTAGGG ünitelerinden oluşan telomerik yapılar bulunmaktadır.Her hücresel bölünme ile birlikte telomerik uçlardan bir miktar DNA kaybedilmektedir.Telomeraz, kendi RNA’sını kalıp olarak kullanarak kendini sentezleme yeteneği olan ve heksomerik parçaları [(TTAGGG)n] kromozomaluçlara ekleyerek telomerik DNA’nın uzatılması, kromozomal uçlardaki kaybın dengelemesi ve korunması görevi olan ribonükleoprotein yapıda bir enzimdir.Kanser vakalarında, hücrenin telomer uzunluğu ve telomeraz aktivitesi incelendiğinde in vivo ortamda tümör oluşumu ve telomeraz aktivitesinin birbiri ile ilintili olduğu gösterilmiştir. İyi huylu tümörlerde telomeraz aktivitesi yoktur ve telomerazları kısaldıkça erken evrelerine geri dönmektedirler. Daha saldırgan seyreden metastatik tümörlerde ise yüksek telomeraz aktivitesi gösterilmiştir


                Son yıllarda yapılan araştırmalarla telomerazın bu fonksiyonlarından farklı olarak hücre proliferasyonu ile alakalı olan işlevleri ortaya çıkartılmıştır. Bu işlevler TERT olarak isimlendirilen ve telomerazın protein alt birimi olan ve telomerazın enzim aktivitesinden bağımsız olarak çalışan yapı ile ilişkilendirilmiştir. TERT β-Katenin/LEF transkripsiyon faktör kompleksine kofaktör olarak etki ederek Wnt arayolunda sinyal artırıcı etkisi gösterir.Böylece hücre, DNA hasarını onarmaya ve RNA bağımlı RNA polimeraz fonksiyonları ile ilişkili olan apoptoz karşı koyma ve hücre proliferasyonu özellikleri kazanır. TERT’in bu özellikleri sadece telomeraz bölgesinde değil aynı zamanda kromozomlar boyunca birçok bölgede kromatinlerl e ilişkili olarak bulunabilir. Çeşitli tümör gruplarında telomeraz aktivitesinin %85 oranında pozitif olduğu saptanmıştır. Bu nedenle telomeraz dolayısı ile TERT aktivitesinin, immortalizasyonda ve tümöral hücrelerin kontrolsüz çoğalmasında rol oynayan önemli mekanizmalardan biri olduğu ve telomeraz aktivitesinin kanser tanısında marker olarak kullanılabileceği düşünülmektedir. Telomerazın bu ek işlevlerinin tümorogeneze olan katkıları tam olarak açıklanamamıştır.Telomeraz enziminin aktivitesini regüle eden genlerin keşfedilmesiyle, gerontolojide ve kanser tedavisinde sürpriz gelişmelerin olması beklenmektedir.


                2.Telomer Nedir?
                Telomerler, ökaryotik kromozomların DNA ve protein içeren uç bölgeleri olup çok sayıda ‘’TTAGGG’’ (genellikle memelilerde görülen dizi) dizi tekrarı içeren heterokromatik yapılardır.Telomer sentezinden telomeraz (telomer terminal transferaz veya revers transkriptaz) enzimi sorumludur.Telomer kavramını ilk defa 1938’de Hermann J. Muller Drosophila melanogaster kromozomu üzerinde çalışarak tanımlamıştır.Muller X radyasyonundan sonraki yapı değişiklikleri ve bu değişikliklerin görülme sıklığını incelemiştir.Çalışmalarının sonucunda, kromozomların uç bölgelerindeki delesyonların ve inversiyonların çok az görüldüğünü saptamıştır.Araştırmalar ilerledikçe kırık uçlu kromozomların daha kolay birleştiği ve normal kromozomların telomer yapılarının kararlı olduğu, ne kırık uçlu kromozomların uçları ile ne de diğer telomerler ile birleşmediği görülmüştür.Bu bilgilerden sonra kromozomların bütünlüğünü sağlayan özel terminal yapıların varlığı kabul edilmiştir(Atlı ve Bozcuk,2002).

                3.Telomerler Ne İşe Yarar?
                Eksonükleazlara ve ligazlara dirençleri olan telomerlerin kromozom stabilitesinde, nükleer yapılaşmada, gen ekspresyonunda,kromozom uçlarının replikasyonlarının tamamlanmasında ve bu uçların birbirleriyle karışmasını ya da kromozomların iç kısımlarıyla reaksiyon vermelerini önlemekte, tümör oluşumunda, yaşlanmada ve hücre bölünmesinde rol aldığı bilinmektedir(Sun vd.,1999).


                Telomerleri kromozomların geri kalan kısımlarından ayıran özelliği; telomerik DNA’ nın hücre siklusuna bağlı olarak kaybı ve yeniden kazanılmasıdır ki bu işleme ‘’Telomer Dinamiği’’ denmektedir.İnsan somatik hücrelerinde telomer dinamiği negatif olup her hücre siklusunda kaybedilen telomerik DNA miktarı, yeniden sentezlenen telomerik DNA miktarından fazladır(Slijepcevic,1998). Hücrelerin her replikasyonunda terminal uçlarından yaklaşık 100 baz çifti (bp) kadar DNA kaybettiği ve hücresel yaşlanmaya yol açtığı ilk defa 1973’de Olovinikov tarafından ileri sürülmüştür(Kavaler vd.,1998).Yaşlılardaki fibroblast, lökosit gibi somatik hücrelerin telomer uzunluklarının, gençlerinkine oranla daha kısa olması da bu hipotezi desteklemektedir.Telomerik tekrarlar her hücre döngüsünde kaybedilir; ancak bu tekrarlar telomeraz enziminin etkisiyle kazanılır


                4. Telomeraz ve Yapısı


                Telomeraz (telomer terminal transferaz, telomer deoksinükleotidil transferaz), kromozomal uçlardaki ‘’TTAGGG’’ dizi tekrarlarının sentezinden sorumlu olan ribonükleoprotein yapıda özel bir DNA polimerazdır(Zheng vd.,1997). İlk defa Tetrahymena’ da Greider ve Blackbum tarafından tanımlanan telomeraz enzimi, daha sonraları insanlarda Morin tarafından HeLa hücrelerinde gösterilmiştir.Embriyonik hücreler ve erişkin kök hücrelerinde aktif olan bu enzim, normal somatik hücrelerde saptanmamakta; immortal kanser hücrelerinde ise yeniden aktive olmaktadır(Gorham vd.,1997)


                5. İnsan Telomeraz Alt Birimleri
                İnsan Telomeraz enziminin bilinen 3 komponenti mevcuttur(Horikawa vd.,1998):1. İnsan telomerazı RNA komponenti (TERC/hTR)2. İnsan telomerazı reverse transkriptazı ( hTERT/h-TRT/h-EST2)3. İnsan telomerazı protein komponenti (TEP 1/ TP 1)550 kDa boyutunda olan telomeraz enzimini diğer revers transkriptazlardan ayıran kendi RNA alt birimini (h-TR) kalıp olarak kullanmasıdır.’’h-TR’’ geni 1995’de Feng ve ark. (Soder vd.,1997) tarafından klonlanmış ve 3 nolu kromozomun uzun kolunda (3q26.3) bulunduğu tespit edilmiştir.h-TR m-RNA ekspresyonuna hem kanserli hem de normal dokuda rastlanmaktadır.
                Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                Yorum yap


                • #9
                  Telomerazın katalitik alt birimi olan ‘’h-TERT’’ i kodlayan gen, 1997’de klonlanmış ve 7 ekson içerdiği belirlenmiştir.İlk ekson telomeraza özgü olup diğerleri başka reverse transkriptazdakil erl e benzerlik göstermektedir(Kevser,2000). Telomeraz aktivitesiyle ‘’h-TERT’’ i kodlayan genin ekspresyon düzeyi arasında güçlü bir korelasyon saptanması, telomeraz aktivitesi regülasyonundan ‘’h-TERT’’ in sorumlu olduğunu düşündürmektedir(Zakian,1995)


                  ‘’TP 1’’, telomeraz kompleksinin regülatör komponenti olup, spesifik olarak telomerazın RNA alt birimini bağlamaktadır(Harrington vd.,1997). RT-PCR ile yapılan incelemelerde, hem telomeraz (+) hem telomeraz (-) hücrelerde büyük TP1 m-RNA ekspresyonuna rastlanması, enzim aktivitesinin kontrolünde gerekli olmadığını düşündürmektedir(Nakayama vd.,1998). Nakayama ve ark. TP1 proteinin post-translasyonel modifikasyonunun, enzimatik aktivitenin regülasyonunda rolü olabileceğini ileri sürmektedir


                  6. Telomerazın Fonksiyonu


                  Ökaryotik hücrelerdeki DNA replikasyonunda ana zincirdeki sentez tek RNA primeri kullanılarak 5’ yönünde kesintisiz olarak tamamlanırken, kesikli zincirdeki sentez 8-12 bp’lik RNA primerleri kullanılarak ‘’Okazaki Fragmanları’’ şeklinde gerçekleşmektedir.Terminal RNA primerlerinin uzaklaşmasına bağlı olarak yeni sentezlenen yavru zincirin 5’ ucunda, 12 bp’lik bir boşluk oluşmaktadır. Kalıp DNA’nın 3’ ucunun normal replikasyon mekanizmasıyla kopyalanamamasına “replikasyon sonu problemi” denmektedir. Bunu telafi edecek moleküler mekanizmaların yokluğunda, her hücre bölünmesinde kromozomal DNA’nın 3’ ucunda, yaklaşık 50-200 nükleotidlik kayıp olmakta vehücresel yaşlanma gelişmektedir. Telomerlerin 3’ ucunda bulunan guanin ve timin yönünden zengin 12-16 nükleotidlik uzantının, uzama evresinde kalıp görevi gördüğü düşünülmektedir. İnsan telomeraz enzimi (h-TR), telomerik DNA dizisine komplomenter olan 8-30 bazlık kısa bir segmentini, zincirin 3’ ucunun uzatılmasında kalıp olarak kullanmaktadır. Telomerazın katalitik alt birimi olan insan telomeraz katalitik alt ünitesi (h-TERT), bu diziye komplementer GGTTAG dizi tekrarlarını sentezleyerek guanin yönünden zengin olan 3’ ucuna ekler. RNA kalıbı, yeni sentezlenen telomerik dizinin 3’ ucuna doğru kayar ve DNA polimeraz, telomeraz enziminin sentezlediği bu diziyi kalıp olarak kullanarak, karşı tamamlayan zincirin sentezini gerçekleştirir(Dikmen ve Doğan,2003).


                  7. Telomer ve Yaşlanma


                  Normal dokulardaki telomerin uzatılmasından sorumlu sistemler bölünme sırasında etkinliklerini sürdürmezler. Bu nedenle telomerler hücre bölünmesi sırasında kısalırlar. Telomer uzunluğu hücrelerin replikatif yaşama süresini belirler. Telomerler kritik uzunluğa kadar kısaldıklarında yaşlanma programı aktive olur. Bundan sonra hücre bölünmesi durur. Fakat yaşamaya ve fonksiyon görmeye devam ederler. Eşey hücrelerinde telomerlerin bakımı aktif olarak yapılmaktadır. Bunun sebebi, bir sonraki nesle kromozom transferi yapılma zorunluluğudur. Bu durum telomer replikasyonunda görevli olan telomeraz enzimi aktivitesi ile gerçekleşmektedir(Atl ı ve Bozcuk,2002)


                  8. Telomer ve Kanser


                  Kanser vakalarında, hücrenin telomer uzunluğu ve telomeraz aktivitesi incelendiğinde bazı önemli bulgular elde edilmiştir. Örnek olarak in vivo ortamda tümör oluşumu ve telomeraz aktivitesinin birbiri ile ilintili olduğuna dair ipuçları vardır. İyi huylu tümörlerde telomeraz aktivitesi yoktur ve telomerazları kısaldıkça erken evrelerine geri dönmektedirler. Daha saldırgan seyreden metastatik tümörlerde ise yüksek telomeraz aktivitesi gösterilmiştir. Telomeraz inhibitörü ilaçlar telomerlere karşı etkili ajanlar olarak önerilebilmektedir(Atlı ve Bozcuk,2002)


                  Araştırma Bulguları;


                  -Kanser Tanısında Belirleyici Olarak Telomeraz


                  Kim ve arkadaşları (1994) hücre ve dokulardaki telomeraz aktivitesinin tayininde kullanılmak üzere TRAP (Telomeric Repeat Amplification Protocol Telomerik Tekrarların Çoğaltılması) yöntemi geliştirmiş ve 24 farklı kanser türünde çalışarak, kanser ile telomeraz ekspresyonu arasında bir korelasyon olduğunu rapor etmişlerdir. Bugüne kadar incelenen farklı tip tümörlerin % 85’inden fazlasında telomeraz aktivitesinin tespit edilmesi, ölümsüz hücrelerde telomerazın tekrar aktive olduğunu göstermektedir(Kim vd.,1994).


                  TRAP metodunun geliştirilmesi ile dokulardaki telomeraz aktivitesinin belirlenmesi, çok sayıda kanser türünde telomeraz ekspresyonunun araştırılmasını sağlamıştır. Günümüzde çok sayıda tümörde telomeraz ekspresyon çalışmaları yapılmaktadır. Bu sonuçlar telomerazın en yaygın olarak bilinen kanser belirleyicisi olduğunu göstermektedir. Shay ve Wright’in 1996 yılında yaptıkları bir çalışmaya göre habis tümörlerin % 85’inin telomeraz aktivitesi gösterdiği bulunmuştur. Habis dokularda tespit edilen bu bulgu, telomerazın tanısal kanser için oldukça önemli bir gösterge olduğunu düşündürmektedir(Shay ve Wright,1996).


                  Tüm eşeysel dokularda telomeraz aktivitesi bulunmaktadır. Bununla beraber periferal kan lökositlerinde ve bazı vücut hücre popülasyonlarında zayıf telomeraz aktivitesi bulunmaktadır. Bazı normal dokularda da (% 6) tümörlerde olduğu gibi telomeraz pozitif olarak belirlenmiştir. TRAP metodunun telomeraz aktivitesini tespit etmek için yeterince hassas olması, tümörlü olması muhtemel dokuları belirlemeyi de sağlamaktadır. Son dönemlerde gerçekleştirilen bir çalışmada 266 premalignant dokunun 38’inin (% 14) telomeraz aktivitesine sahip olduğu bulunmuştur(Shay ve Wright,1996).


                  Kanser teşhisi için standart histopatolojik tekniklerl e biyopsi yapılarak tanı konmaktadır. Bu geleneksel yöntemlerin yanı sıra telomeraz aktivitesinin ölçümü oldukça özgün bir gösterge olarak kullanılabilir. Telomerazın en önemli klinik yararı idrar, kan, tükürük gibi vücut sıvılarından tespit edilebilmesidir. Örneğin; kan kanseri için yapılan çeşitli tanılar çok kesin sonuçlar verememektedir. Bu nedenle daha duyarlı belirteçler kan kanserini tespit etmek için önemli bulgular sunmaktadır. Kan kanseri olan bir hastanın idrarından ya da kan hücrelerinden telomeraz aktivitesi belirlenebilir(Kim,1997)
                  Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                  Yorum yap


                  • #10
                    -Kolorektal Kanserler ve Telomeraz


                    Daha önceki çalışmalarda GIS’de telomeraz aktivitesinin bulunmadığı rapor edilmiş olmasına rağmen, Bachor ve ark.(Bachor vd.,1999), en fazla özofagus, takiben ince ve kalın bağırsaklar ve en düşük midede olmak üzere tüm GlS'de telomeraz aktivitesi saptamışlar ve bu farklılığın yenilenen epitelin rejenerasyon zamanından kaynaklandığını ileri sürmüşlerdir. Kolorektal adenokanserlerd eki telomeraz aktivitesi ilk defa Chadeneau ve ark. tarafından incelenmiş; kolorektak Ca’ların %93’ünde (Zheng vd.,1997) telomeraz aktivitesi saptanırken, benign patolojilerde (adenomatöz polip, Crohn, divertiküler hastalık) aktivite tespit edilememiştir


                    -Beyin Tümörleri ve Telomeraz


                    Normal beyin dokusunda telomeraz aktivitesi saptayamayan Nakatani ve ark.(Nakatani vd.,1997), malign tümörlerde %81 (Glioblastoma multiformde %60, oligodendrogliomada %100), metastatik tümörlerde %100 aktivite tespit etmişlerdir. Telomeraz (+) olan hastaların prognozunun, telomeraz (-) olanlara göre daha kötü, yaşam sürelerinin ise daha kısa olduğunu belirleyen araştırmacılar, telomeraz aktivitesinin beyin tümörlerinin teşhisinde ve prognoz tayininde kullanılabileceğini ileri sürmektedirler


                    Meme Kanserleri ve Telomeraz
                    Bednarek ve ark.(Bednarek vd.,1997), meme kanserlerinin %95’ini, fibroadenomların ise %20’sini (1/5) telomeraz (+) bulmuşlardır. Enzim aktivitesi ile tümörün boyutu, evresi, lenf nodu metastazı, östrojen progesteron reseptör miktarı arasında istatistiksel olarak anlamlı bir korelasyon saptayamadıklarından, prognoz tayininde güvenilir olmadığını düşünmektedirler. 'Evre I' meme kanserleri ile in situ duktal kanserlerin çoğunda telomeraz aktivitesine rastlanması, telomeraz reaktivasyonunun erken dönemde gerçekleştiğini göstermektedir. Telomeraz aktivitesinin aksiller nod (-) olan meme kanserlerinde %70-80, aksiller nod (+) olanlarda ise %95 oranında (+) bulunması, aksiller nod (-) olan primer meme kanserlerinden hangilerinin daha agresif tedavi alacağının belirlenmesinde telomerazın yararlı olabileceğini düşündürmektedir


                    Mesane Kanserleri ve Telomeraz


                    Yoshida ve ark.(Yoshida vd.,1997), mesane Ca’lı doku örneklerinin %86’sında telomeraz aktivitesini (+) bulurken, tümör evresiyle telomeraz aktivitesi arasında korelasyon saptayamamıştır. Mesane kanserlerinde yapılan çeşitli çalışmaların sonuçları, Tablo 2’de verilmiştir. Düşük grade’li (Grade I ve II) tümörlerde telomeraz aktivitesiyle sitolojiyi karşılaştıran Kavaler ve ark.(Kavaler vd.,1998), tanı koyabilme oranının telomeraz için %82, sitoloji için %31 olduğunu tespit etmiştir (p<0.001). Benzer şekilde Ramakumar ve ark. (28), spot idrar örneklerinde grade I tümörler ile karsinoma insitu vakalarının "telomeraz" ile yakalanma şansının, sitolojiye ve diğer tümör belirteçlerine göre daha yüksek olduğunu tespit etmiştir.Tümörlü ve komşu normal dokuları RT-PCR ile inceleyen Ito ve ark.(Ramakumar vd.,1999), telomeraz aktivitesiyle hTERT m-RNA ekspresyonu arasında belirgin bir korelasyon bulunduğunu ve “h-TERT” ekspresyonunun telomeraz aktivitesinin hız sınırlayıcı determinantı olduğunu ileri sürmektedir.


                    -Serviks Kanserleri ve Telomeraz
                    HPV enfeksiyonu servikal tümör etiyolojisinde yer alan en önemli risk faktörlerinden birisidir. Telomeraz (+) olan servikal tümörlerin %91.3'ü ve telomeraz (+) olan CIN'lerin %40'ı HPV (+) bulunmuştur(Pao vd.,1997). HPV'ye ait E6 ve E7 onkoproteinlerinin, servikal displazi ve karsinoma patogenezinde rol oynadığı düşünülmektedir. Nair ve ark.(Nair vd.,2000) ise, E6 protein ekspresyonunun izlendi ği yüksek riskli HPV enfeksiyonu ile telomeraz ekspresyonu arasında belirgin bir korelasyon olduğunu ileri sürmektedir.Pao ve ark.(Pao vd.,1997), hastalığın evresine paralel olarak enzim aktivitesinde progresif artış saptamışlardır. CIN 1'lerin %5-16'sı, CIN 2'lerin % 24-30'u ve CIN 3'lerin %42-57'sinin karsinoma in situya veya invaziv karsinoma ilerlemesi ve bu lezyonlarda telomeraz pozitifliğinin de birliktelik göstermesi, bu sonucu desteklemektedir (Ma vd.,2000)


                    Endometrium Kanserleri ve Telomeraz


                    Endometrium kanseri, Amerikalı kadınlarda en sık görülen kanser tipi olup özellikle postmenopozaldönemde pik yapmaktadır. Brien ve Shroyer(Brien vd.,1997), endometriyal kanserlerde saptanan telomeraz aktivitesinin tümörün histolojik tipinden, evresinden, büyüklüğünden, myometriyal invazyon derecesinden bağımsız olduğunu tespit etmişlerdir. Normal endometrium örneklerinde erken proliferatif fazda (1-6. günler) telomeraz aktivitesisaptanamazken, mid-proliferatif fazda (8-11. günler) enzim aktivitesinde artış başladığı, geçproliferatif faz (11-14.günler) ve erken sekretuar fazda (15-19.günler) aktivitenin pik yaptığı, midsekretuar fazda (20-24.günler) giderek azalan aktivitenin geç sekretuar fazda (25-28.günl er) tamamen kaybolduğu tespit edilmiştir(Kyo vd.,1997). Benzer şekilde Kyo ve ark. da(Kyo vd.,1997),endometriumdaki telomeraz aktivitesi ile hücrelerin proliferatif kapasitesininkorelasyon gösterdiğini ve h-TERT ekspresyonunun menstrüel siklus fazlarına karakteristikolarak değiştiğini saptamışlardır. Bu nedenl e telomeraz aktivitesinin, post-menopozal kadınlardaki endometrial kanserin erken dönemde teşhisinde marker olarak kullanılabilmesi mümkündür. Telomeraz aktivitesinin proliferatif fazda indüklenip, diferansiasyon fazında azalması, ayrıca hormon replasmanı uygulanan post-menopozal kadınların endometriumları telomeraz (+) iken, tedavi almayanların endometriumlarının telomeraz (-) bulunması, enzim aktivitesinin over kaynaklı steroid hormonlar tarafından regüle edildiğini düşündürmektedir.


                    Over Kanserleri ve Telomeraz


                    Over kanserleri, kadın genital sistem tümörleri içerisinde en kötü prognoza sahip olan tümörlerdir. Epitelyal over tümörlerinin ayırıcı tanısının doğru yapılması, özellikle reprodüktif çağdaki kadınların tedavilerinin planlanmasında çok önemlidir.Kinugawa ve ark.(Kinugawa,2000), 38 yaş altında olup düzenli adet gören kadınların normal over dokularında telomeraz aktivitesinin belirgin şekilde daha yüksek olduğunu ve artan yaşla birlikte aktivitenin azaldığını tespit etmişlerdir. Bu sonuç, normal overlerde gözlenen telomeraz aktivitesinin, primordial follikül kaybına bağlı olarak artan yaşla birlikte azaldığını ve enzim aktivitesinin over kaynaklı steroid hormonlar tarafından regüle edildiğini düşündürmektedir.


                    Tedavide Telomeraz Enziminin Yeri
                    Telomeraz inhibisyonu; hTER veya hTERT’nin transkripsiyonu engellenerek, hTER veya hTERT mRNA’sı parçalanarak, hTERT’nin sentezi ve sentez sonrası modifikasyonu engellenerek, enzimin aktif bölgesi bloke edilerek, hTER ile hTERT’nin birleşmesi önlenerek, enzim kompleksinin çekirdeğe transfer olması veya substratı olan telomerlere tutunmasıengellenerek sağlanabilmektedir. Bugüne kadar üretilen telomeraz inhibitörleri Tablo I’de verilmiştir. Ayrıca, telomeraz inhibitörlerinin kan dolaşımında daha uzun süre kalabilecek şekilde kapsüle edilmesi, yıkıma uğramadan tümörün bulunduğu alana ulaşması ve yüksek oranda malign hücreler tarafından alınması hedeflenmektedir(Dikmen vd.,2006)


                    Tablo I. Telomeraz İnhibitörleri(Dikmen vd.,2006)

                    Telomeraz; kendi RNA’sını kullanarak sentezlediği telomerik dizileri kromozomların ucuna ekleyerek, RNA kalıbının fiziksel blokajıyla inhibe edilebilir.İnsan telomerazının RNA dizisine komplementer dizi içeren "Peptid nükleik asit" (PNA), negatif yüklü deoksiriboz-fosfat birimi yerine nötral N-(2-aminoetil) glisin üniti içeren modifiye nükleotidler ilave edilerek inhibe edilebilirler. Nükleazlarla veya proteazlarla degradasyona dirençli olan "PNA"lar, invitro şartlarda etkili inhibisyon yapmakta ve kanserli hastaların tedavisinde umut vaad etmektedir. Telomeraz inhibisyonunda diğer bir hedef,telomerazın nükleotid bağlayıcı kısmının bloke edilmesidir. Dideoksiguanin (ddG) ve Azidotimidin(AZT) gibi ajanlar, tercihen bu bölgeyi inhibeetmektedir. Henüz spesifik inhibitörleri bulunmamış olmakla beraber, telomerazın DNA ile bağlantısını sağlayan kısmın bloke edilmesi de tedavide yeni bir umut kaynağı olabilir. Telomeraz inhibitörleri, rezistan kanser hücrelerinin yeniden çoğalmasını önlemek için diğer terapilerle birlikte veya onları takiben kullanılabilir. Tümöre spesifik olan ilk tedavi rejimi olmakla birlikte, özellikle telomeraz aktivitesi gösteren hücrelerde (hematopoetik hücreler, germ hücreleri, aktive T ve B lenfositler, proliferatif hücreler) yan etkileri görülebilir (Dikmen ve Doğan,2003). Ayrıca, tüm ileri evre kanserlerde hTERT eksprese edilirken normal hücrelerde hTERT ekspresyonunun olmaması, hTERT geninin proksimal promotorunun üniversal bir gen tedavi sistemi kurmak amacıyla kullanılabileceğini düşündürmektedir (Dikmen vd.,2006)
                    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                    Yorum yap


                    • #11
                      9. Sonuç ve Tartışma


                      Farklı tip kanserlerde yapılan çalışmalar, telomeraz aktivitesinin diagnostik bir belirteç olarak kullanılabileceğini göstermektedir. Küçük miktardaki örneklerin ve vücut sıvılarının (idrar örnekleri, plevra/bronkoalveoler lavaj sıvıları, asit sıvısı, pelvik/periton yıkama sıvıları) bu yöntemle incelenebilmesi, telomerazın belirteç olarak kullanım değerini arttırmaktadır. Benign inflamatuvar lezyonlarda ve normal dokularda izlenen zayıf telomeraz aktivitesi, replikasyon gösteren kök hücreleri ya da aktive lenfositlerdeki telomeraz ekspresyonu ile açıklanmaya çalışılmaktadır. Telomeraz inhibisyonu ile özellikle kısa telomerli tümöral hücrelerde yaşam süresinin kısalması, immortalizasyonda ve kanser gelişiminde telomeraz reaktivasyonunun rol aldığını desteklemektedir. Ancak bazı insan tümörleri ve immortal hücre serilerinin, telomeraz aktivitesi göstermemelerine rağmen uzun telomerlere sahip olmaları, telomer elongasyonunu sağlayan alternatif mekanizmaların bulunduğunu düşündürmektedir. İnsan telomerazının alt birimlerinin klonlanması, telomeraz aktivitesini regüle eden genlerin keşfedilmesi ve telomerazın dışında immortalizasyona yol açan diğer mekanizmaların aydınlatılmasıyla, gerontolojide ve kanser tedavisinde sürpriz gelişmelerin olması beklenmektedir.


                      Conflict of Interest / Çıkar Çatışması
                      Yazarlar tarafından herhangi bir çıkar çatışması beyan edilmemiştir.
                      No conflict of interest was declared by the authors.


                      10. Kaynaklar


                      Atlı K, Bozcuk AN., 2002. Telomerler ve Hücresel Yaşlanma. Geriatri, 5, 111-4.
                      Bachor C, Bachor OA, Boukamp P., 1999. Telomerase is active in normal gastrointestinal mucosa and not upregulated in precancerous lesions. Cancer Res Clin Oncol , 125, 453-60.
                      Bednarek AK, Sahin A, Brenner AJ, et al., 1997. Analysis of telomerase activity levels in breast cancer: positive detection at the in situ breast carcinoma stage I. Clinical Cancer Research, 3, 11-16
                      Brien TP, Kallakury BVS, Lowry CV,et al., 1997. Telomerase activity in benign endometrium and endometrial carcinoma. Cancer Research , 57:2760-4.
                      Dikmen G, Doğan P., 2003. Kanser ve telomeraz. Türk Klin Tıp Bilim., 23
                      Dikmen GZ, Dikmen E, Doğan P., 2006. Kanserde telomeraza yönelik tedavi stratejileri. Hacettepe Tıp Der., 37:49-55
                      Gorham H, Yoshida K, Sugino T, et al., 1997. Telomerase activity in human gynaecological malignancies. J Clin. Pathol., 50:501-4.
                      Harrington L, McPhail T, Mar V, Zhou W, et al., 1997. A mammalian telomerase-associated protein. Science , 275:973-6
                      Horikawa I, Oshimura M, Barrett JC., 1998. Repression of the telomerase catalytic subunit by a gene on human chromosome 3 that induces cellular senescence. Molecular Carcinogenesis , 22:65-72.
                      Ito H, Kyo S, Kanaya T, et al., 1998. Expression of human telomerase subunits and correlation with telomerase activity in urothelial cancer. Clin Cancer Res , 4:1603-8.
                      Kavaler E, Landman J, Chang Y, et al., 1998. Detecting human bladder carcinoma cells in voided urine samples by assaying for the presence of telomerase activity. Cancer ,82:708-14.
                      Kevser Piskin Özden., 2000. Telomeraz. Hacettepe Tıp Dergisi, 31(2):158-68.Kim NW., 1997. Clinical Implications of Telomerase in Cancer. Europ J Canc ,33(5): 781-6.Kim NW, Piatyszek MA, Prowse KR, Harley CB, West MD, Ho PL, Coviello GM, Wright WE, Weinrich SL, Shay JW., 1994. Specific Association of Human Telomerase Activity with Immortal Cells and Cancer. Science , 266: 2011-5.
                      Kinugawa C, Murakami T, Okamura K, et al., 2000. Telomerase activity in normal ovaries and premature
                      ovarian failure. Tohoku J Exp Med , 190:231-8.Kyo S, Takakuro M, Kohama T, et al., 1997.
                      Telomerase activity in human endometrium. Cancer Res., 15, 57(4):610- 4.
                      Ma YY, Wei SJ, Lin YC, et al., 2000. PIK3CA as an oncogene in cervical cancer. Oncogene ,19:2739-44.
                      Nair P, Jayaprakash PG, Nair MK, et al., 2000. Telomerase, p53 and human papillomavirus infection in the uterine cervix. Acta Oncologica , 39(1):65-70
                      Nakatani K, Yoshimi N, Mori H, et al., 1997. The significant role of telomerase activity in human brain tumors. Cancer , 80:471-6.
                      Nakayama T, Kyo S, Takakura M, et al., 1998. hTERT is a critical determinant of telomerase activity in renalcell carcinoma. Int J Cancer , 78:539-43.
                      Pao CC, Tseng CJ, Lin CY, et al., 1997. Differential
                      expression of telomerase activity in human cervical cancer and cervical intraepithelial neoplasia lesions. Journal of Clinical Oncology, 15(5):1932-7.
                      Ramakumar S, Bhuiyan J, Besse J, et al., 1999.
                      Comparision of screening methods in the detection of bladder cancer. The Journal of Urology , 161:388-94.
                      Shay JW, Wright WE., 1996. Telomerase Activity in Human Cancer. Curr Opin Oncol , 8(1): 66-71.
                      Slijepcevic P., 1998. Telomere length regulation-A view from the individual chromosome perspective. Experimental Cell Research , 244:268-74.
                      Soder AI, Hoare SF, Muir S, et al., 1997. Amplification, increased dosage and in situ expression of the telomerase RNA gene in human cancer. Oncogene , 14:1013-21.
                      Sun D, Lopez-Guajardo CC, Quada J, et al., 1999.
                      Regulation of catalytic activity and processivity of human telomerase. Biochemistry , 38:4037-44.
                      Yoshida K, Sugino T, Tahara H, et al., 1997.
                      Telomerase activity in bladder carcinoma and its implication for noninvasive diagnosis by detection of exfoliated cancer cells in urine. Cancer , 79:362-9.
                      Zakian VA., 1995. Telomeres: Beginning to understand the end. Science , 270:1601-6.
                      Zheng P-S, Iwasaka T, Yamasaki F, et al., 1997. Telomerase activity in gynecologic tumors. Gynecologic Oncology , 64:171-5


                      Ali Efe TİRYAKİOĞLU1, Mustafa Nuri ÖZKAN1, Seda KAYIM1, Özkan BAĞCI2,
                      Kadir ÇEVİKER3*, Burak TATAR4, Rasih YAZKAN5, Evrim ERDEMOĞLU4
                      1 Süleyman Demirel Üniversitesi Tıp Fakültesi, Isparta
                      2 Süleyman Demirel Üniversitesi Tıp Fakültesi Tıbbi Genetik A.D., Isparta
                      3 Süleyman Demirel Üniversitesi Tıp Fakültesi Kalp Damar Cerrahisi A.D., Isparta
                      4 Süleyman Demirel Üniversitesi Tıp Fakültesi Kadın Hastalıkları ve Doğum A.D., Isparta
                      5 Süleyman Demirel Üniversitesi Tıp Fakültesi Göğüs Cerrahisi A.D., Isparta
                      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                      Yorum yap


                      • #12
                        Telomer disfonksiyonu sonucu görülen hastalıklar

                        ÖZET


                        Telomer dinamiği, hem yaşlanma hem de kanser etyopatogenezinin anlaşılmasında önemlidir. Telomerler, kromozomal uçların DNA kırığı gibi algılanmasını önleyen koruyucu yapılardır ancak replikasyon sonu problemi nedeniyle her hücre bölünmesinde bir miktar kısalarak replikatif yaşlanmaya yol açar. Telomerik dizileri sentezleyen telomeraz, başlıca iki komponentten oluşmaktadır: Telomerik DNA sentezinde kalıp olarak kullanılan RNA komponenti (hTR/hTERC) ve kromozomal uçlara telomerik tekrarları ekleyen katalitik komponent (hTERT). Telomeraz aktivitesi, hücrelerin sonsuz proliferasyonları ve tümörogenez için gereklidir. Bununla birlikte, son yıllarda diskeratozis kongenita, idiyopatik pulmoner fibrozis ve kemik iliği yetmezliği sendromlarında, telomerazın komponenti olan TERT ve TERC genlerindeki heterozigot mutasyonlar tanımlanmıştır. Kısa telomerlerle karakterize olan bu hastalıklarda, telomerik kısalık hastalığın erken başlaması ve ciddiyeti ile korelasyon göstermektedir. Kısa ve disfonksiyonel telomerleri hedef alan tedavi stratejileri, kalıtsal erken yaşlanma sendromları ve yaşa bağlı hastalıklarda umut verici olabilir


                        Telomerler, kromozomların ucunda yer alan DNA/protein yapısında özelleşmiş koruyucu yapılardır [1]. Yapılan çalışmalar, bu koruyucu telomerik yapıların kaybının, genomik instabiliteye neden olarak belli kanserlere ve yaşla ilişkili rahatsızlıklara yol açtığınıortaya koymaktadır.


                        Telomerlerin 3’ ucunda guaninden zengin tek zincirli uç, kendi üzerinde katlanarak kement benzeri tloop yapısı oluşturur [4]. T-loop yapısıyla birlikte telomerik uçlara bağlanan proteinler de kromozomal uçları koruyarak, bu uçların DNA hasarı olarak algılanmasını engeller [5]. T-loop yapısının oluşturulmasında ve stabilitesinde rol alan 6 telomer spesifik protein “Shelterin” kompleksini meydana getirir, bu proteinlerden TRF1, TRF2 ve POT1 direkt TTAGGG tekrarlarına tutunur, birbirlerine TIN2, TPP1 ve Rap1 proteinleri ile bağlanırlar [6]. TRF1, TRF2 ve Tin2 ise telomerazın tutunmasını bloke ederek telomerik kısalmaya neden olduklarından, telomerlerin negatif regülatörleri olarak kabul edilmektedir. POT1 ve TTP1, telomerlerin pozitif regülatörleridir.


                        Belli bir kısalığın altındaki telomerlerde t-loop konformasyonu değişir. Telomer bozukluğu sonucunda kromozomal uçlarda füzyonlar oluşabilir ve/veya bu uçlar çift zincir kırıkları gibi algılanabilir ve DNA tamir mekanizmaları devreye girer. DNA hasarını gösteren 53BP1, γH2AX, BRCA1 ve Mre11 komplekslerinin de telomerik uçlara lokalize olması bu görüşü desteklemektedir.


                        Telomeraz, replikatif yaşlanma ve kanser


                        Somatik hücreler nedeniyle karşıt zincirin tam kopyalanamaması sonucu her replikasyonda 50-200 bp telomerik DNA kaybederler, sonuçta kısalan disfonksiyonel telomerler hasarlı DNA olarak algılanır ve “replikatif yaşlanma” olarak bilinen kalıcı büyüme duraklaması izlenir. Ancak hücre siklusunu kontrol altında tutan proteinlerin (p53/p21 ve pRB/p16) inaktive olduğu durumlarda, hücreler yaşlanma aşamasını atlayarak prolifere olmaya devam ederler ki, bu da genomik instabiliteye ve hücre ölümüne yol açar. Az sayıdaki hücre (10-5-10-7), telomeraz reaktivasyonu ile telomerik uzunluklarını korumayı başarıp bu kriz periyodunu aşabilir [9].


                        Telomeraz, ters transkriptaz aktivite gösteren katalitik alt ünite (hTERT) ve RNA alt ünitesi (hTR) içeren ribonükleoprotein yapıda bir komplekstir [10,11]. hTR, telomerik DNA sentezi için kalıp görevi görürken hTERT telomerik tekrarları (TTAGGG) kromozomal uçlara ekler [12]. Somatik hücrelerin çoğunda, embriyonik dönemde hTERT’in transkripsiyonu represe olduğundan telomeraz aktivitesi izlenmemekte ancak tümörlerin %90’ında yüksek düzeyde telomeraz aktivitesi saptanmaktadır [13]. Tümör gelişimi sürecinde, telomeraz aktivitesindeki artışta farklı mekanizmaların rol oynadığı düşünülmektedir; ancak somatik hücrelerde inaktif durumdaki enzimin reaktive olarak aktif forma mı geçtiği yoksa kök hücre ya da öncü hücrelerdeki enzimin aktivitesine belirgin artış sonucu yüksek bir düzeye mi ulaştığı henüz kesin olarak bilinmemektedir [14]. Tümörlerin geri kalan %10’luk kısmında ise telomerik uzunluklar alternatif yollarla (ALT: alternative lengthening of telomeres) korunmaktadır.


                        Telomer disfonksiyonu


                        Telomer disfonksiyonu, telomer homeostazının bozulmasıdır. Replikatif yaşlanmaya bağlı izlenen telomerik kısalma, t-loop yapısı ve/veya telomerik proteinlerin harabiyeti veya regülasyonundaki bozukluk, telomerik disfonksiyona yol açmaktadır. Yaşlanmanın, genetik ve çevresel faktörlerinde telomer disfonksiyonuna neden olduğu yeni yeni anlaşılmaktadır. Hücreler disfonksiyonel telomerlere cevap olarak yaşlanmaya veya apopitozise gidebilir ya da genomik instabilite gelişir


                        Telomerlerin kritik bir kısalığa ulaşması yaşlanmayı başlatan faktörlerden birisidir. Telomerik kısalma sonucunda hücre bölünmesinin kısıtlanması, premalign hücrelerin çoğalmasını ve tümörogenezis için gerekli ilave mutasyonların kazanılmasını engeller. Bu nedenle, telomerik kısalma, tümörden koruyucu bir mekanizma olarak kabul edilmektedir [17]. Kök hücrelerle yapılan çalışmalar da DNA hasarını takiben aktive olan hücre siklusu kontrol noktalarının hücreleri apopitozise ve yaşlanmaya yönlendirdiğini, bu kontrol mekanizmalarının inaktivasyonunun genomik instabiliteye yol açarak tümör oluşumunu tetiklediğini desteklemektedir.


                        Genomik instabilite, kanser gelişiminde en erken izlenen neoplastik değişimlerden birisidir [19]. Telomerik disfonksiyon hipotezi, kromozomal uçlar telomerik yapılar ile korunmadığında telomerlerin kısaldığını, telomerik füzyonların oluştuğunu ve bunun da genomik instabiliteye yol açtığını ileri sürmektedir (Şekil 1). Sonuç olarak genomik bütünlük kaybı, hücre büyümesini kontrol altında tutan hTERT gibi birtakım genlerin regülasyonunda bozukluğa yol açmakta ve sonuçta tümör oluşumuna neden olmaktadır [20,21]. Ancak genomik instabilitenin tek nedeni telomer disfonksiyonu değildir; DNA tamir mekanizmalarındaki hatalar, kontrol noktalarındaki defektler, kromozomal segregasyon defektleri ve viral infeksiyonlar, genomik instabiliteye yol açan diğer faktörlerdir.
                        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                        Yorum yap


                        • #13
                          Kanser gibi yaşlanma ile ortaya çıkan hastalıklarda risk faktörü kabul edilen çevresel faktörlerin, kısa telomerlerle korelasyon gösterdiği tespit edilmiştir. Beyaz kan hücrelerinin telomer uzunluklarında saptanan azalmanın, oksidatif hasar veya strese yanıt olarak hücre yaşam döngüsündeki azalmayı yansıttığı düşünülmektedir. Kronik strese maruz kalan kadınların daha kısa telomerlere ve düşük telomeraz aktivitesine sahip oldukları saptanmıştır [23]. İnsan immünyetmezlik virüsü (HIV) infeksiyonunun da CD8+ T lenfositlerindeki telomeraz aktivitesini azalttığı ve telomerlerde kısalmaya yol açtığı bildirilmektedir [24]. Sisplatin tedavisi alan yaşlı hastaların da telomer uzunluklarında kısalma olduğu rapor edilmektedir [25]. Ayrıca sigara içimi, telomerik kısalmaya yol açarak telomerik disfonksiyona yol açabilmektedir. Valdes ve arkadaşları kadınlarda sigara içimi ile beyaz kan hücrelerindeki telomer kısalması arasında doz bağımlı bir ilişki olduğunu ve sigara içiminin yaşlanmayı hızlandırdığını ileri sürmektedir


                          Telomerazın telomerik uçları korumaktan başka fonksiyonları var mıdır?


                          Son yıllarda yapılan araştırmalar, telomerazın telomer devamlılığını sağlamaktan başka apopitoz regülasyonunda, DNA tamirinde, kök hücre fonksiyonunda rolü olduğunu ortaya koymaktadır [27]. Ayrıca, yapılan mikroarray analizler, telomerazın hücre siklusu, metabolizma, diferansiyasyon ve sinyal iletiminde görevli genlerin ekspresyonunu regüle ettiğini göstermektedir Son yıllardaki araştırmalar, telomerik kısalma ile karakterize olan diskeratozis kongenita (DKC), kemik iliği yetmezliği sendromları ve idiyopatik pulmoner fibrozis (İPF)’in, telomerazın alt ünitelerini kodlayan genlerdeki mutasyonlar sonucu ortaya çıktığını göstermiştir [30]


                          DKC, X’e bağlı veya otozomal dominant geçiş gösteren, cilt pigmentasyonu, tırnak bozuklukları ve ağızda lökoplaki ile karakterize bir erken yaşlanma sendromudur. Ortalama görülme yaşı 16 olup, görülme sıklığı 1/1,000,000’dur [31]. DKC klinik bulguları, dokuların proliferatif kapasitelerindeki bozulma ile ilişkilidir; yenilenmeye ihtiyaç duyan cilt, oral mukoza ve kemik iliği DKC’de en çok etkilenen dokulardır. En sık ölüm sebebi ise kemik iliği yetmezliği, akciğer hastalıkları ve kanserdir.


                          DKC’nin X’e bağlı geçiş gösteren formunda, hTR/ hTERT ile birlikte bulunan ve nükleoler bir protein olan diskerini kodlayan DKC1 geninde mutasyon saptanmıştır. Bu hastaların hücrelerinde telomerler kısadır ve hTR düzeyi düşüktür [33,34]. DKC’nin daha nadir görülen otozomal dominant geçişli formunda ise, hTR’yikodlayan TERC veya hTERT’i kodlayan TERT geninde mutasyon mevcuttur. DKC’de genellikle “missense” (yanlış anlamlı) mutasyonlara rastlanmaktadır. Hastalığın her iki formu da telomerik kısalma ile karakterize olup, daha kısa telomerli hastalarda klinik tablo daha ağır seyretmektedir.


                          DKC’li olguların %80’inde genellikle aplastik anemi şeklinde kemik iliği yetmezliği görülmektedir. Bu nedenle DKC, kalıtsal kemik iliği yetmezliği sendromlarından birisi sayılabilir [37]. Ayrıca aplastik anemi, miyelodisplastik sendrom, paroksismal noktürnal hemoglobinüri ve esansiyel trombositoz gibi kemik iliği yetmezliği sendromlarında da TERC ve TERT genlerinde çeşitli mutasyonlar ve bu hastaların lökositlerinde telomerik kısalık saptanmıştır
                          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                          Yorum yap


                          • #14
                            İPF, skar dokusu oluşumu ve akciğer fonksiyon testlerinde bozulma ile karakterize ilerleyici bir akciğer hastalığıdır. Genellikle 50 yaşın üzerindeki erişkinleri etkiler. Spontan remisyon göstermeyen, tedavisi olmayan öldürücü bir hastalıktır [38]. Olguların yaklaşık %0.5- 2.2’si aileseldir, bunların da %20’sinde otozomal dominant geçiş saptanmıştır [39]. Ailesel İPF’de, genellikle TERT geninde nükleotid delesyonu, “missense” ve “splice site” (kesim bölge) mutasyonlarına rastlanmaktadır [30]. Akciğerler, yenilenmek için telomeraz eksprese eden kök hücrelere ihtiyaç duyduğundan, telomeraz eksikliği fibrozise yol açmaktadır. Pulmoner fibrozisli hayvan modellerinde, akciğer epitelyum hücre hasarında telomeraz ekspresyonunda artış izlenmesi, telomerazın bu hastalıktaki koruyucu rolünü ortaya koymaktadır


                            Tablo 1’de DKC, İPF ve kemik iliği yetmezliği sendromlarının klinik özellikleri ile izlenen mutasyonlar verilmektedir. TERC mutasyonları genelde DKC veya
                            kemik iliği yetmezliğinde izlenirken, TERT mutasyonları genelde İPF ve kemik iliği yetmezliğinde izlenmektedir. Telomerik kısalık her 3 hastalıkta ortak bir bulgu olup, hastaların fibroblastlarının, lenfoblastlarının ve lökositlerinin telomerleri belirgin şekilde kısadır. Telomerik kısalık erken başlangıç ve hastalığın ciddiyeti ile korelasyon göstermektedir. Aynı genlerdeki mutasyonların farklı klinik tablolara yol açması, genotip farklılığına, yaşa ve çevresel faktörlere bağlanmaktadır


                            DKC, kemik iliği yetmezliği sendromları ve İPF, telomerlerin uzatılmasıyla tedavi edilebilir mi?


                            Telomer kökenli replikatif yaşlanmaya bağlı görülen hastalıkların tedavisinde, in vitro şartlarda üretilmiş hücre ve dokuların kullanılabileceği ileri sürülmektedir. Bunu test edebilmenin en iyi yöntemi, kişiden izole edilen kısa telomerli hematopoietik hücrelerin izole edilmesi, in vitro ortamda büyütülmesi, adenoviral hTERT ile transfekte edilmesi ve telomerlerin belli bir uzunluğa eriştikten sonra tekrar hastaya verilmesidir. Bu yaklaşımın en büyük avantajı, hastanın kendi hücreleri kullanıldığı için rejeksiyon olmaması ve kemik iliği hücrelerinin ablasyonuna gerek kalmamasıdır [30,41]. Sonuç olarak, telomeraz ve telomerik uzunlukların regülasyonu, hem kanser hem de yaşa bağlı izlenen hastalıkların tedavisinde önemli bir hedef olarak karşımıza çıkmaktadır.
                            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                            Yorum yap


                            • #15
                              Kronik servisitin viral etiyolojisi ve rekombinant interferona terapötik yanıtı

                              ZW Qian1, SJ Mao , XC Cai , XL Zhang , FX Gao , MF Lu , XS Shao , YY Li , XK Yang , YA Zhuo , et al.
                              Bağlantılar yıkılmak Üyelik
                              • 1Pekin Tian Tan Hastanesi.
                              • PMID: 2173655
                              Soyut

                              Eroziv ve normal servikslerden alınan örneklerden DNA hibridizasyon tekniği ve virüs izolasyon yöntemi ile kronik servisitin papillomavirüs tip 16(HPV-16), herpes simpleks virüs tip 2 ve sitomegalovirüs (CMV) enfeksiyonları ile ilişkili olduğu gösterildi. Rekombinant interferon alfa 1 (rIFN-alfa 1) ile bir tedavi küründen sonra, vakaların %93.8'inde klinik iyileşme ve %60'ında belirgin iyileşme görüldü. HPV-16 ve HSV saptama oranları, tedavi öncesine kıyasla rIFN-alfa 1 tedavisinden sonra önemli ölçüde düştü. Bir Çin bitkisel ilacı olan Astragalus membranaceus'un interferon tedavisine sinerjik olduğu gösterilmiştir.

                              .................................................. ...........................


                              Astragalus membranaceus'un (AM) anti-tümör etkileri ve mekanizmaları ve spesifik immünopotansiyelizasyonu: Durum ve beklenti

                              Yazar bağlantıları bindirme panelini açar
                              Shanshan Li a 1Yi Sun b 1Jin Huang aBin Wang cYinan Gong aYuxin Fang veYangyang Liu ve dShenjun Wang ve dYi Guo a eHong Wang dZhifang Xu ve dYongming Guo a d _ a
                              Acupuncture Research Center, Tianjin University of Traditional Chinese Medicine, Tianjin, 301617, China b
                              Nephropathy and Rheumatology Department, Second Affiliated Hospital of Tianjin University of Traditional Chinese Medicine, Tianjin, 300250, China c
                              Tianjin Medical University Cancer Institute of Hospital, National Clinical Research Center for Cancer, Tianjin, 300060, China d
                              Acu-moxibustion and Tuina Department, Tianjin University of Traditional Chinese Medicine, Tianjin, 301617, China e
                              College of Traditional Chinese Medicine, Tianjin University of Traditional Chinese Medicine, Tianjin, 301617, China
                              Received 18 December 2019, Revised 10 March 2020, Accepted 23 March 2020, Available online 1 April 2020, Version of Record 5 May 2020.

                              Show less
                              Mendeley'e ekle
                              Paylaşmak
                              Anmak
                              https://doi.org/10.1016/j.jep.2020.112797Hakları ve içeriği alın

                              Soyut
                              Astragalus and AM-based TCMs, combined with chemotherapy, can enhance anti-tumor efficacy in cancer patients, in addition to reduce complications and avoid side effects induced by chemotherapy. By using various cancer models and cell lines, AM has been found to be capable of shrinking or stabilizing tumors by direct anti-proliferation or pro-apoptosis effect on tumor cells. Further, AM ameliorates immunosuppression by activating M1 macrophages and T cells tumor-kill function in Ayrıca AM, tümör mikroçevresinde(TME). AM'nin ayrıca kemoterapinin etkinliğini arttırmaya ve metastazı önlemeye yardımcı olabilecek sistemik bağışıklığı iyileştirdiği de bulunmuştur. Böylece bu derleme, AM'nin tüm kanser tedavisi sürecinde yardımcı bir tedavi olarak anlaşılmasına katkıda bulunur ve aynı zamanda daha etkili anti-tümör ilaçlarının geliştirilmesi için faydalı bilgiler sağlar. AM ve immün kontrol noktası terapilerinin kombinasyonu umut verici bir terapötik beklentiye sahiptir ve kemoterapiler veya diğer terapilerle birlikte AM'nin tümör büyümesi ve metastazı üzerindeki doğrudan etkililik ve mekanizmaların gözlemlenmesi, daha fazla in vivodoğrulama ve ayrıca daha fazla klinik araştırma gerektirir.

                              giriiş
                              Küresel nüfusun hızlı büyümesi ve yaşlanması ile birlikte kanser, önde gelen ölüm nedeni olarak giderek daha fazla öne çıkmaktadır (Bray ve ark., 2018). Tüm kanser vakalarının insidansının 2008'de 12,7 milyon yeni vakadan 2030'da 22,2 milyona çıkacağı tahmin edilmektedir (Bray ve ark., 2012). Bu nedenle, kanser oluşumu, patofizyolojisi ve terapötik seçenek geliştirme, dünya çapında, özellikle Çin gibi düşük ve orta gelirli ülkelerde artan bir ilgi görmektedir.

                              Cerrahi ve kemoradyoterapi gibi geleneksel tedaviler, birkaç ciddi dezavantaja sahipken doğrudan kanser hücrelerine etki edebilir. İlk olarak, çoğu kanser hastası, ameliyat yapmak için çok geç teşhis edilir. Ameliyat endikasyonları olsa bile ameliyat sonrasında kanama, enfeksiyon, lenfödem gibi bir dizi komplikasyon gelişebilir. İkincisi, kemoradyoterapi hala cerrahiye ana adjuvan tedavi veya ilerlemiş malign tümörleri olan hastalarda tercih edilen tedavi olmasına rağmen, kemik iliği baskılanması, karaciğer ve böbrek fonksiyonlarında bozulma, bulantı ve kusma veya lokal radyoterapi gibi birçok yan etki ve komplikasyon da vardır. zarar. Daha da önemlisi, düzenli olarak kullanılan birkaç kemoterapötik ilaç, kanser hücrelerini kanser kök hücrelerine dönüştürür,

                              Biriken kanıtlar, kanser hücrelerinin özel bir mikro-ortamda veya nişte, yani TME'de bulunduğunu doğrulamıştır. Tümör hücreleri, hızlı çoğalmalarını, hayatta kalmalarını, yerel istilalarını ve uzak metastazlarını sağlamak için çevreleyen normal hücreleri katkıda bulunanlar olarak hizmet edecek şekilde toplamalı ve yeniden programlamalıdır (Casey ve diğerleri, 2015). Tümör gelişimi ile, kanser hücreleri ve bağışıklık hücreleri arasındaki etkileşimleri içeren TME'deki moleküler ve hücresel süreçlerde dinamik bir değişiklik vardır. T hücrelerinin anti-tümör immün yanıtlarına aracılık etmedeki etkinliği göz önüne alındığında, T hücre bazlı immünoterapi, kansere karşı önemli ve umut verici bir terapötik yaklaşım olarak kabul edilir (Chen ve Mellman, 2017). Bununla birlikte, immün monoterapilerle tedavi edilen hastaların çoğu, istenen terapötik yanıtı elde edememektedir. Ana nedenler, infiltre T hücrelerinin çoğalmasını, göçünü ve hayatta kalmasını engelleyen tümör bölgelerinde bozulmuş antijen sunum kabiliyeti dahil olmak üzere şiddetli bağışıklık baskılayıcı mikro-ortam olabilir. Bu nedenle konakçı bağışıklık durumunun nasıl iyileştirileceği, T hücre bazlı immünoterapide çok önemlidir (Nicolas-Boluda ve Donnadieu, 2019).

                              Astragalus membranaceus (Çince AM, Huang qi ) baklagil ailesine ait bir bitkidir. AM özellikle kuru kökü Astragali Radix, geleneksel Çin tıbbında (TCM) popüler bir toniktir. İmmünomodülatör, anti-hiperglisemik, anti-inflamatuar, antioksidan ve anti-viral aktiviteler gibi çoklu biyofonksiyonlara sahip olduğu bulunmuştur (Shao ve diğerleri, 2004). Modern farmakolojik kanıtlar, AM ve aktif bileşenlerinin güçlü anti-tümör aktivitesine sahip olduğunu ve konakçı bağışıklık fonksiyonunu geliştirdiğini göstermiştir. Bu nedenle, bu derleme AM'nin kanser hastalarında kemoterapinin neden olduğu yan etkileri ve komplikasyonları azaltma ve anti-tümör etkinliğini artırma kapasitesini özetleyecektir. Bu arada mekanizma, AM'nin doğrudan odağı daralttığını veya kanser durumunu stabilize ettiğini, kemoterapinin etkinliğini artırmak ve çeşitli yollarda metastazı önlemek için organik bağışıklığı artırdığını kanıtlıyor, AM'nin anti-tümör etkileri ve mekanizmalarının sistematik bir incelemesini ve değerlendirilmesini sağlamak. Daha da önemlisi, AM'nin bir bağışıklık arttırıcı olarak çoklu anti-tümör hedeflerini ve sinyal yollarını vurgulayarak, tümör immün mikro-ortamını (TIME) düzenleyebildiğine dair kanıtlar sağlanacak, kontrol noktası immünoterapisi ve kemoterapi için bir güçlendirici görevi görebilir.

                              Bölüm snippet'leri
                              Yöntem

                              Ocak 2000'den Ocak 2020'ye kadar sınırsız yayınlanmış çalışmalar için PubMed veritabanını aradık. Anahtar kelimeler arasında [“ Astragalus membranaceus ” veya “ Huangqi ”] veya [“ Astragalus ”] ve [“tümör” veya “kanser” veya “bağışıklık” bulunur. veya “bağışıklık”]. Dil İngilizce ve Çince ile sınırlıydı. Filtreleme işlemi ilk olarak 422 makalenin tarandığı sitenin arama motoru tarafından yapılmıştır. 221 makale, yazarlar tarafından özetin olmaması veya özette temaya uygun olmaması nedeniyle hariç tutulmuştur.

                              Astragalus membranaceus'un genel tanıtımı
                              AM ilk olarak 2000 yıl önce Han Hanedanlığı'nın "Shen Nong's Otları"nda kaydedilmiştir [Li ve diğerleri, 2019a, Li ve diğerleri, 2019b]. Çinli doktor da buna “ huang qi ” diyor, ancak bu esas olarak “ Astragali Radix ” adlı AM'nin köklerine atıfta bulunuyor . AM, güç eksikliği, iştahsızlık, spontan terleme, ödem ve apse olarak ortaya çıkan canlılık eksikliği olan hastaları tedavi etmek için yaygın olarak bir tonik olarak kabul edilir. Ayrıca idrara çıkmayı indükleyebilir ve irin boşalmasını ve ayrıca yeni dokunun büyümesini teşvik edebilir.

                              Astragalus membranaceus kanser hastalarında kemoterapinin yan etkilerini azaltır ve terapötik etkilerini iyileştirir.
                              APS, mide kanseri ve kolon kanseri dahil olmak üzere çeşitli tümörlerde daha yaygın olarak kullanılır. Mide kanseri için yaygın olarak kullanılan bir ilaçla kombine edilen 15 TCM'ye dayanan sistematik bir inceleme, APS enjeksiyonunun klinik semptomları hafifletebileceğini (olasılık oranı ve %95 güven aralığı, 3.06 (1.01, 8.99), daha yüksek bir performans durumu elde ettiğini ve daha üstün olduğunu gösterdi. FOLFOX rejimini tek başına kullanmaktan ziyade kemoterapiye lökopeni ve gastrointestinal reaksiyonu azaltmada (Zhang ve diğerleri, 2017).

                              Astragalus membranaceus anti-tümör etkilerinin mekanizmaları
                              AM, tümör hayvan modellerini veya hücre dizilerini kullanarak, NSCLC, karaciğer kanseri, mide kanseri, meme kanseri ve yumurtalık kanseri gibi çeşitli tümör modellerinde doğrudan anti-tümör aktivitesi göstermiştir. Mevcut literatürlere dayanarak, AM'nin esas olarak anti-tümör etkilerini, tümör hücrelerinin proliferasyonunu doğrudan inhibe ederek ve apoptozu teşvik ederek uyguladığı tahmin edilmektedir; kemoterapilerin etkinliğini arttırmak, potansiyel olarak tümör hücresi metastazını önlemek ve organik veya lokal artırarak TME'yi iyileştirmek

                              Çözüm
                              AM, çoklu biyoaktiviteye sahip TCM'de yaygın olarak bir tonik olarak kullanılır. Şekil 2'de sonuçlandırmak için, AM'nin ve aktif bileşenlerinin, kemoterapilerle birleştiğinde, kemoterapilerin neden olduğu yan etkileri ve komplikasyonları azaltabildiği ve kanser hastalarında etkinliği artırabildiği gösterilmiştir. Çeşitli kanser modellerini ve hücre dizilerini kullanan AM'nin, doğrudan anti-çoğalma veya tümör hücrelerinin pro-apoptozisi yoluyla tümörleri küçültme veya stabilize etme yeteneğine sahip olduğu bulunmuştur.

                              Rekabetçi çıkar beyanı
                              Yazarların bu makale ile ilgili herhangi bir çıkar çatışması yoktur.

                              teşekkür
                              Bu çalışma, Çin Ulusal Doğa Bilimleri Vakfı (NSFC) No. 81704146 , 81273868 , 81873369 ve 81873368 , Tianjin Belediye Çalışma ve Sosyal Güvenlik Bürosu No. 2018015 tarafından mali olarak desteklenmiştir .

                              Research data for this article
                              Data not available / No data was used for the research described in the article
                              Further information on research data
                              Referanslar (81)
                              • R. Zhou ve ark. Astragalus membranaceus özü, PI3K/AKT/mTOR sinyal yolu yoluyla meme kanseri hücrelerinin çoğalmasını engeller BMC Kompl. Alternatif Med. (2018)
                              • J. Zhang ve ark. Astragalus membranaceus'tan bir izoflavon olan formononetin, yumurtalık kanseri hücrelerinin proliferasyonunu ve metastazını inhibe eder J. Etnofarmakol. (2018)
                              • J. Yu et al. Yeni bir Astragalus membranaceus polisakaritinin intrinsik mitokondriyal yollar yoluyla indüklediği insan mide karsinomu MGC-803 hücrelerinin apoptozu Int. J. Biol. Makromol. (2019)
                              • B.Yang et al. H22 tümör taşıyan farelerde Astragalus membranaceus polisakkaritlerinin antitümör ve immünomodülatör aktivitesi Int. J. Biol. Makromol. (2013)
                              • X. Wu ve ark. PD-1 blokajının kanser immünoterapisinde uygulanması Bilgisayar. Yapı. Biyoteknoloji. J.(2019)
                              • W. Wei et al. TLR-4, RAW264.7 hücrelerinin Astragalus polisakarit RAP ile indüklenen sitokin ekspresyonunun sinyal yollarına aracılık edebilir J. Etnofarmakol. (2016)
                              • J. Wang ve ark. Shenqi Fuzheng Enjeksiyonunun Balb/c farelerinde siklofosfamid kaynaklı immünosupresyon üzerindeki immüno-arttırıcı etkileri J. Etnofarmakol. (2012)
                              • BJ Skaggs ve ark. Lupus eğilimli farelerde CD8+ T baskılayıcı/düzenleyici hücrelerin aktivasyonu ile bağışıklık toleransının uyarılması Hımm. immünol. (2008)
                              • BM Shao et al. Çin şifalı bir bitki olan Astragalus membranaceus'un köklerinden polisakkaritler için bağışıklık reseptörleri üzerine bir araştırma Biyokimya. Biyofiz. Araş. Komün. (2004)
                              • AR Safa ve ark. Glioblastoma kök hücreleri (GSC'ler) epigenetik plastisite ve farklılaştırılmış GSC olmayanlar ve GSC'ler arasındaki karşılıklı dönüşüm Genler ve hastalıklar (2015)
                              Daha fazla referans görüntüle (35)
                              tarafından alıntılandı
                              • Astragalus membranaceus var'ın kökünden biyoaktif pterokarpanlar. Moğol 2022, Fitokimya Özeti göster
                              • Q-işaretlerine dayalı geleneksel Çin bitkilerinin kesin bir etkinlik belirleme stratejisi: Bir vaka olarak Astragali radix'in antikanser etkinliği 2022, Bitki Tıbbı Özeti göster
                              • Bir taşla iki kuş: YQSSF, kemoterapinin neden olduğu miyelosupresyonu hafifletmek için kemik iliği hücrelerinin hem proliferasyonunu hem de apoptozunu düzenler 2022, Etnofarmakoloji Dergisi Özeti göster
                              • Radix Astragali'den altı flavonoid bileşeninin ekstraksiyon ve saflaştırma işlemlerinin, parçacık sürüsü optimizasyonu ve genetik algoritma ile birlikte BP sinir ağı kullanılarak optimizasyonu 2022, Sanayi Bitkileri ve Ürünleri Özeti göster
                              • Dirençli melanomda gövdenin bastırılması ve kemosensibilitenin arttırılması, PD-L1 aşağı regülasyonu yoluyla Astragalus polisakarit tarafından indüklenmiştir. 2022, Avrupa Farmakoloji Dergisi Özeti göster
                              • Astragaloside IV, fibroz gelişimini sürekli olarak baskılayarak ve pSmad3C/3L ve Nrf2/HO-1 yollarını düzenleyerek hepatosellüler karsinomu inhibe eder 2021, Etnofarmakoloji Dergisi Özeti göster
                              Scopus ile ilgili tüm alıntı makaleleri görüntüleyin
                              Önerilen makaleler (6)
                              • Araştırma makalesi Kalikosin ve türevlerinin kardiyovasküler koruyucu etkisi ve mekanizması Chinese Journal of Natural Medicines, Cilt 18, Sayı 12, 2020, s. 907-915 Özeti göster
                              • Araştırma makalesi Astragaloside IV, Vav3 aracılı Rac1/MAPK sinyalini baskılayarak meme kanseri hücre istilasını inhibe eder
                                International Immunopharmacology, Cilt 42, 2017, s. 195-202 Özeti göster
                              • Araştırma makalesi NF-κB/MAPK sinyal yolunu aktive ederek RAW264.7 hücrelerinde Astragaloside IV'ün bağışıklık düzenleme mekanizması International Immunopharmacology, Cilt 49, 2017, s. 38-49 Özeti göster
                              • Araştırma makalesi Bileşik Astragalus ve Salvia miltiorrhiza özleri, çok hedefli mekanizma ile hepatoselüler karsinomda MAPK tarafından düzenlenen TGF-β / Smad sinyalini modüle eder Etnofarmakoloji Dergisi, Cilt 169, 2015, s. 219-228 Özeti göster
                              • Araştırma makalesi Astragalus mongholicus ve Astragalus membranaceus'tan biyoaktif triterpen ve flavonoidin tandem kütle spektrometrisi ile ultra basınçlı sıvı kromatografisi ile hassas profilinin çıkarılması için hızlı bir yöntem Journal of Chromatography B, Cilt 1085, 2018, s. 110-118 Özeti göster
                              • Araştırma makalesi H22 tümör taşıyan farelerde Astragalus membranaceus polisakkaritlerinin antitümör ve immünomodülatör aktivitesi International Journal of Biological Macromolecules, Cilt 62, 2013, s. 287-290 Özeti göster
                              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                              Yorum yap

                              Hazırlanıyor...
                              X