Duyuru

Collapse
No announcement yet.

Dulavrat otu, Burdock, Pıtrak, Klette, Arctium Lappa L

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Dulavrat otu, Burdock, Pıtrak, Klette, Arctium Lappa L

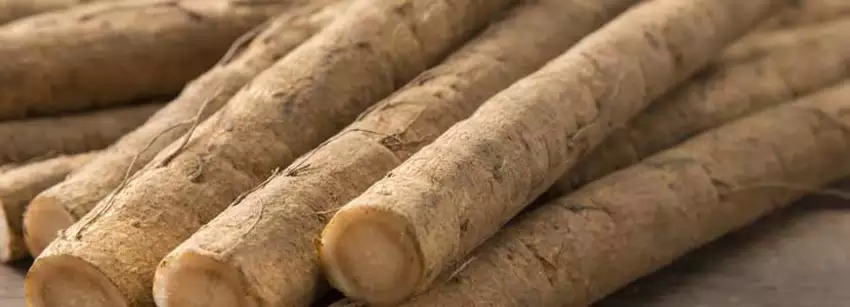
    İki Yıllık | 0,5-1,8m | 7-9 Aylar | Ça,Ho,Na,Ar | Kökü, Yağı

    Dulavrat otu, Pıtrak, Klette, Arctium Lappa L.
    Dul Avrat otu Syn: Arctium majus
    Ulu avrat otu Arctium vulgare
    Şifalı Dul avrat otu Arctium major
    Lappa major

    Familyası; Bileşikgillerden, Korbbütengewaechse, Asteracea

    Drugları; Dulavrat otukökü: Bardanae radix
    Dulavrat otuotunun genellikle kökleri çay, tentür, natürel ilaç, ekstre ve eterik yağ yapımında kullanılır.

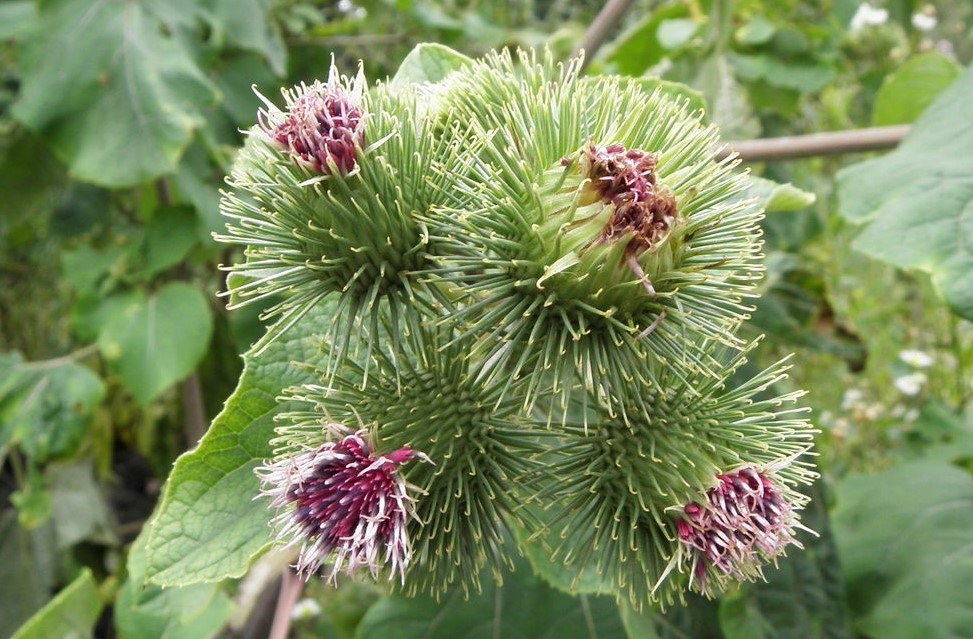
    Giriş; Dulavrat otu oldukça çok türü mevcuttur, bizi bunlardan sadece üç türü ilgilendirmektedir. Bunlar: a) Şifalı Dulavrat ot; Arvtium lappa, küçük dulavrat otu; A. Minus ve tüylü dulavrat otunu sayabiliriz. Kozalak şeklin-deki meyvelerinin etrafındaki kanca şeklindeki dikensi kupa yapraklarının hayvan ve insanlara takılması nedeni ile Dulavrat otu denir. Tarihte ilk defa M.Ö Çinliler tarafından kullanıldığı ve onu diğer ülkelerin takip ettiğidir. Vatanının Avrupa ve Asya’nın ılıman bölgelerinin olduğu ve buradan Amerika’ya taşındığı bilinmektedir.

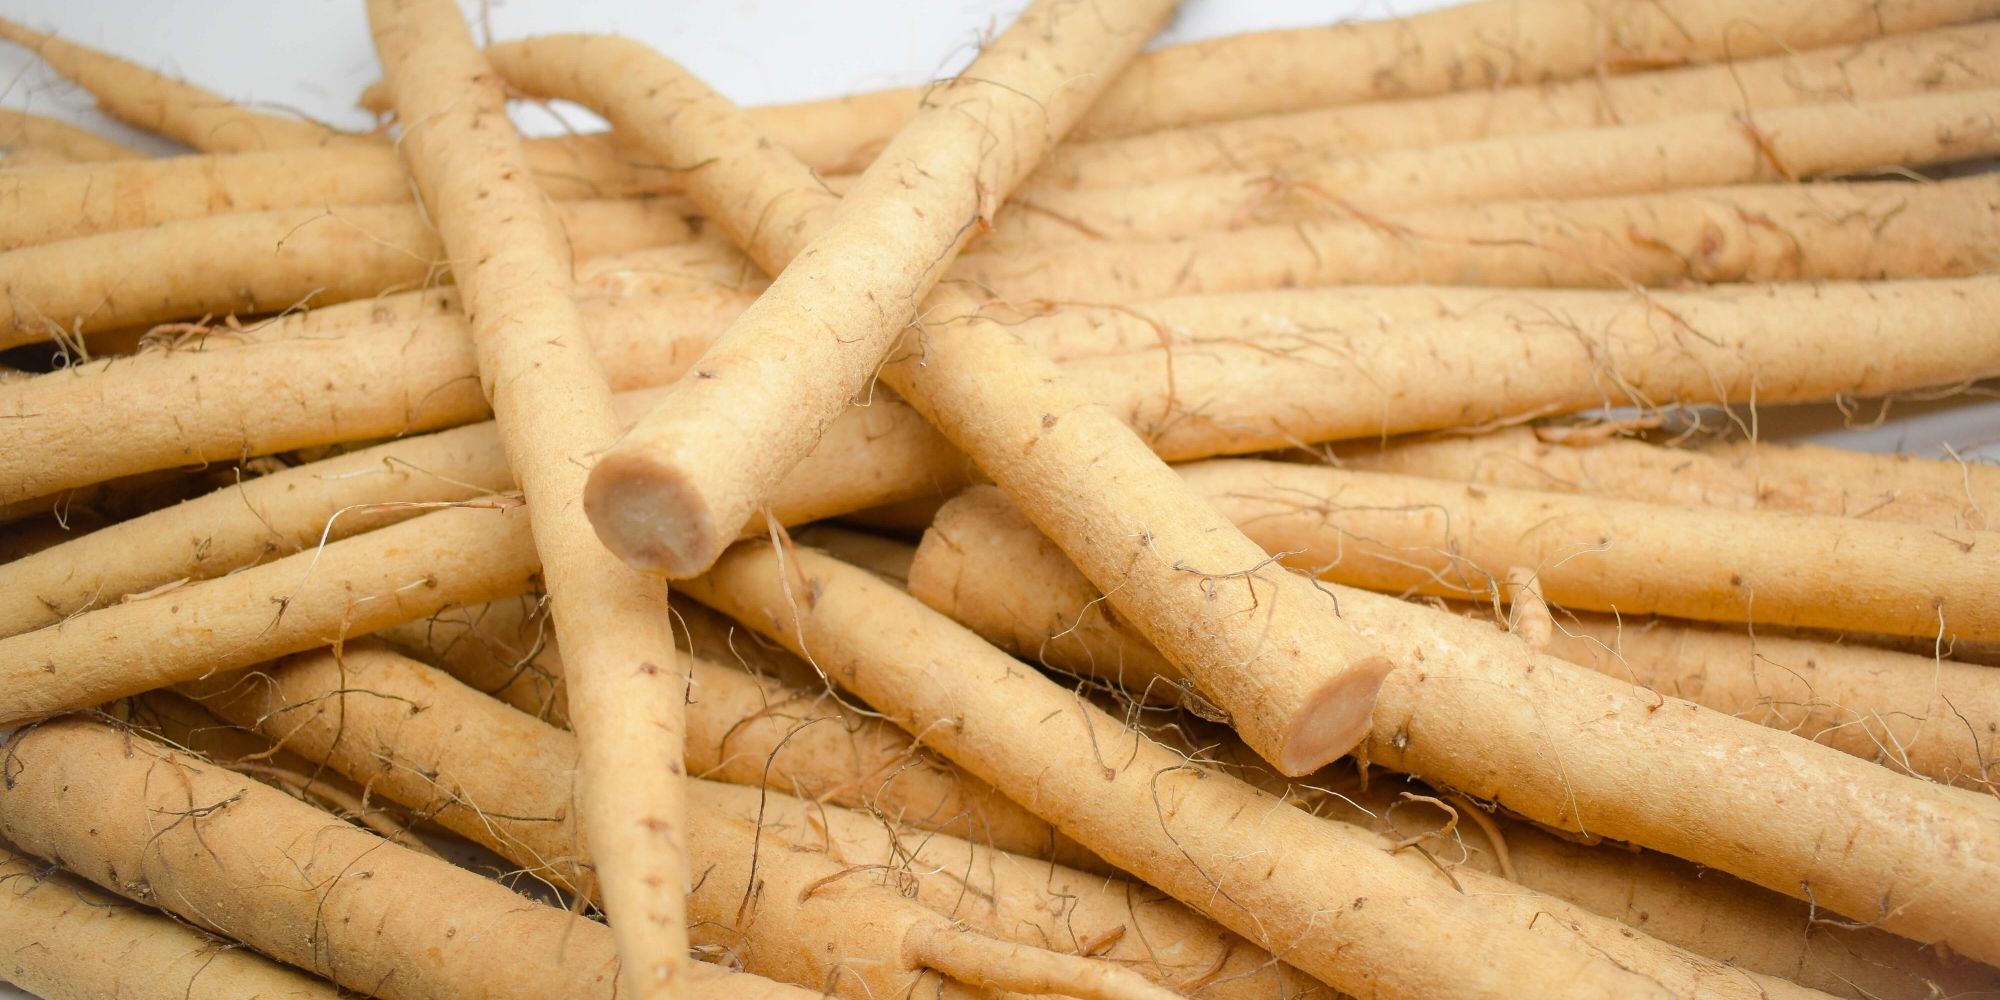
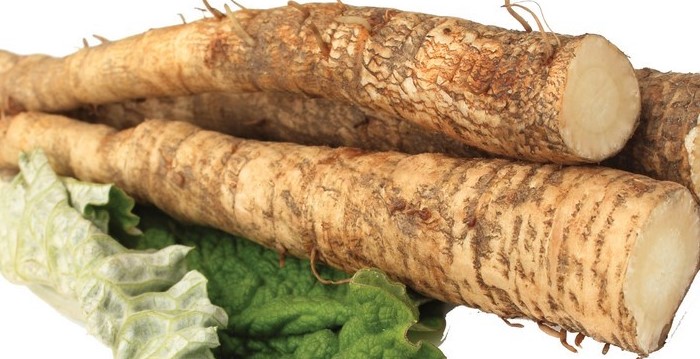
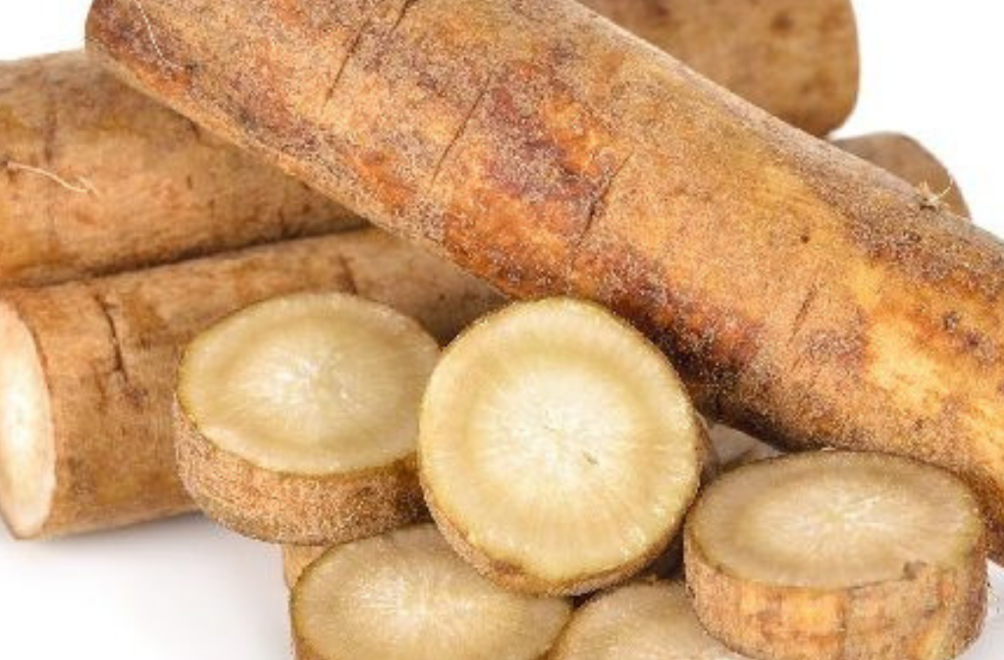
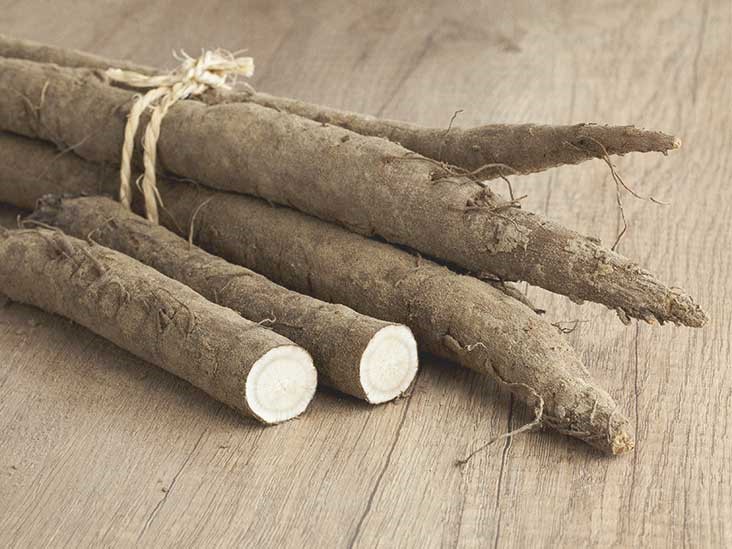
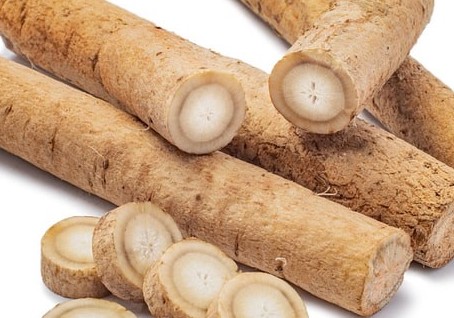
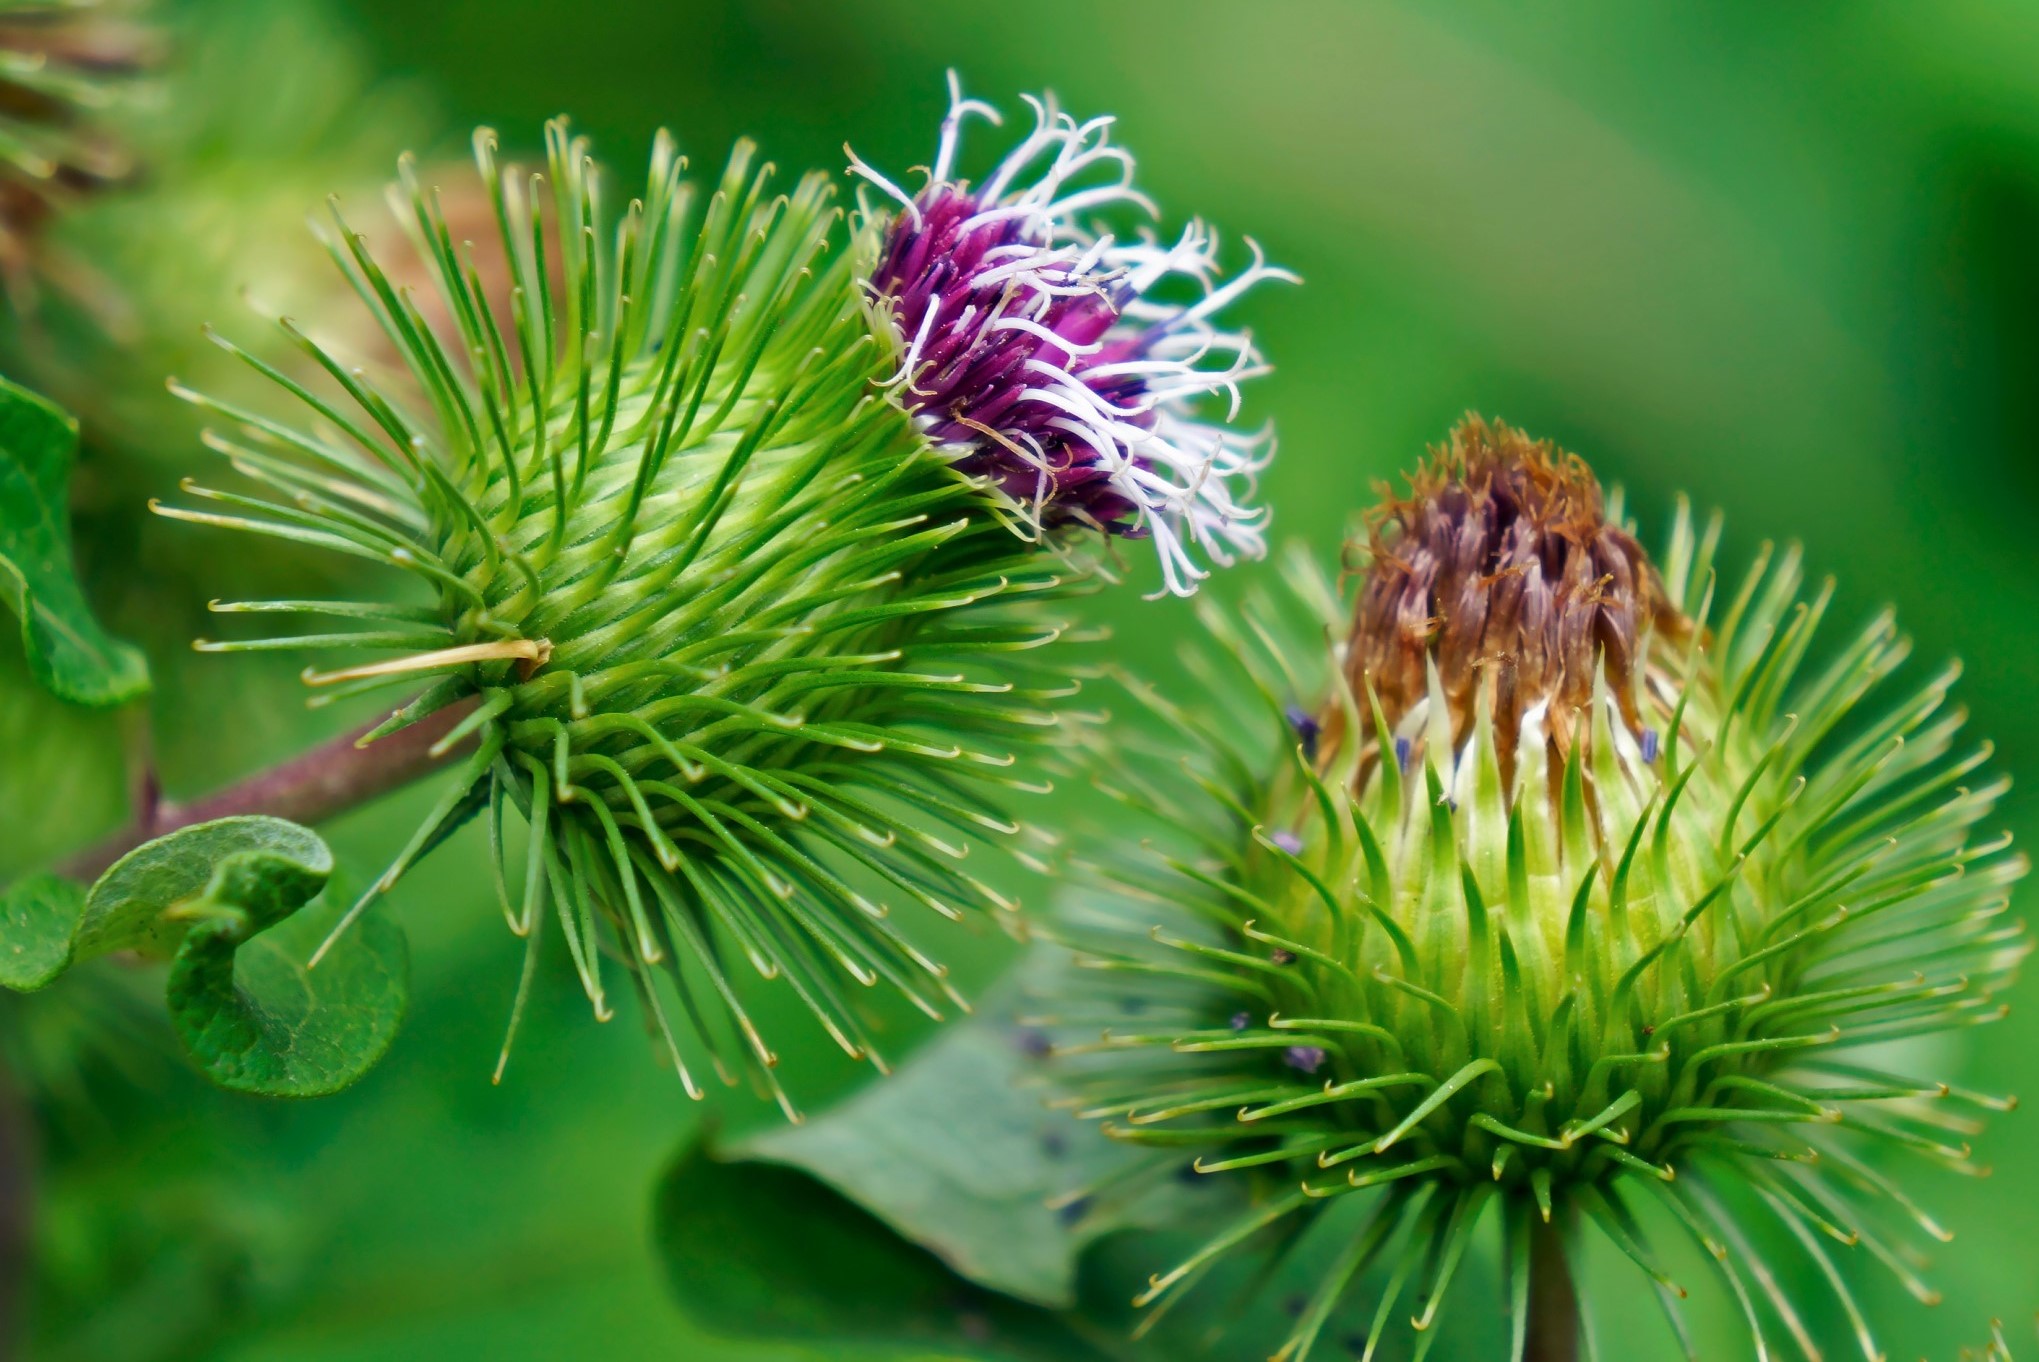
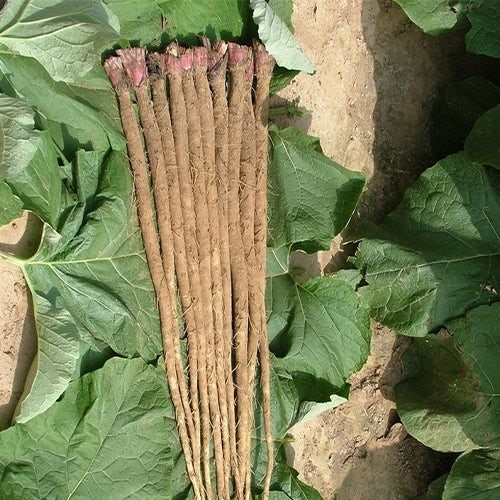
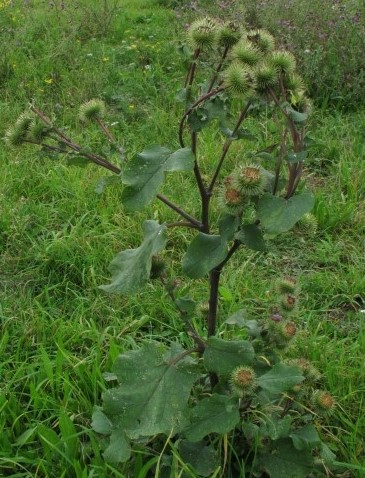
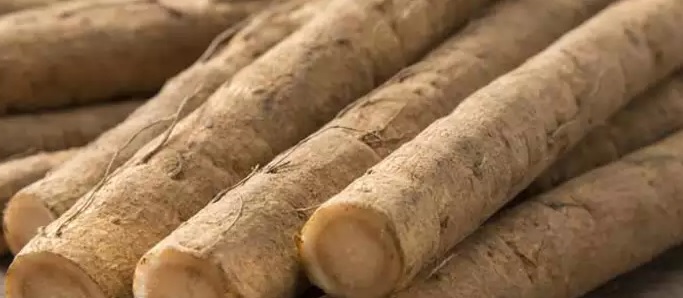
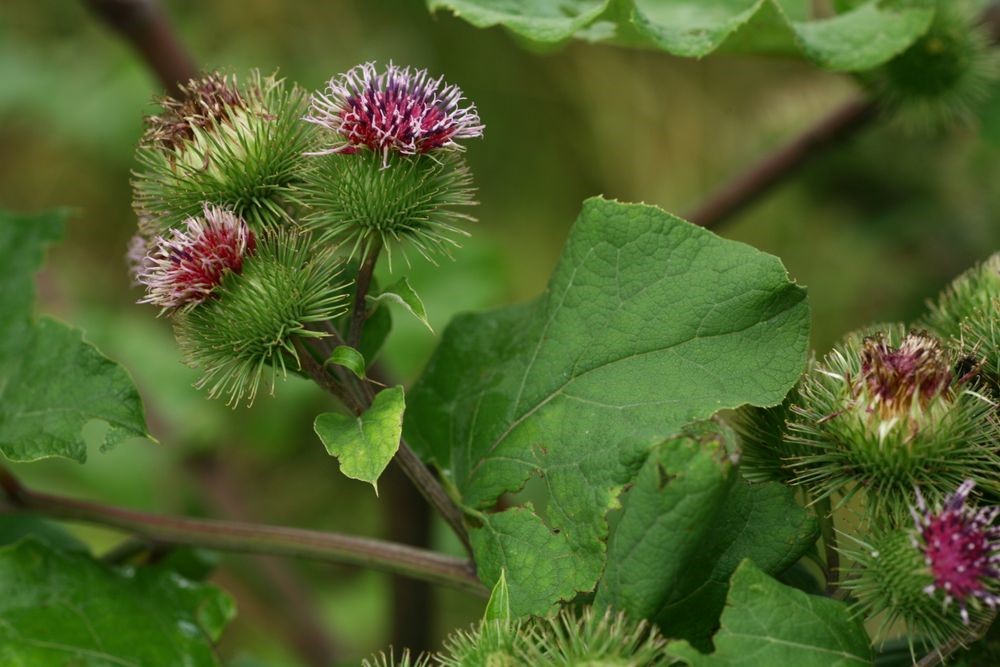
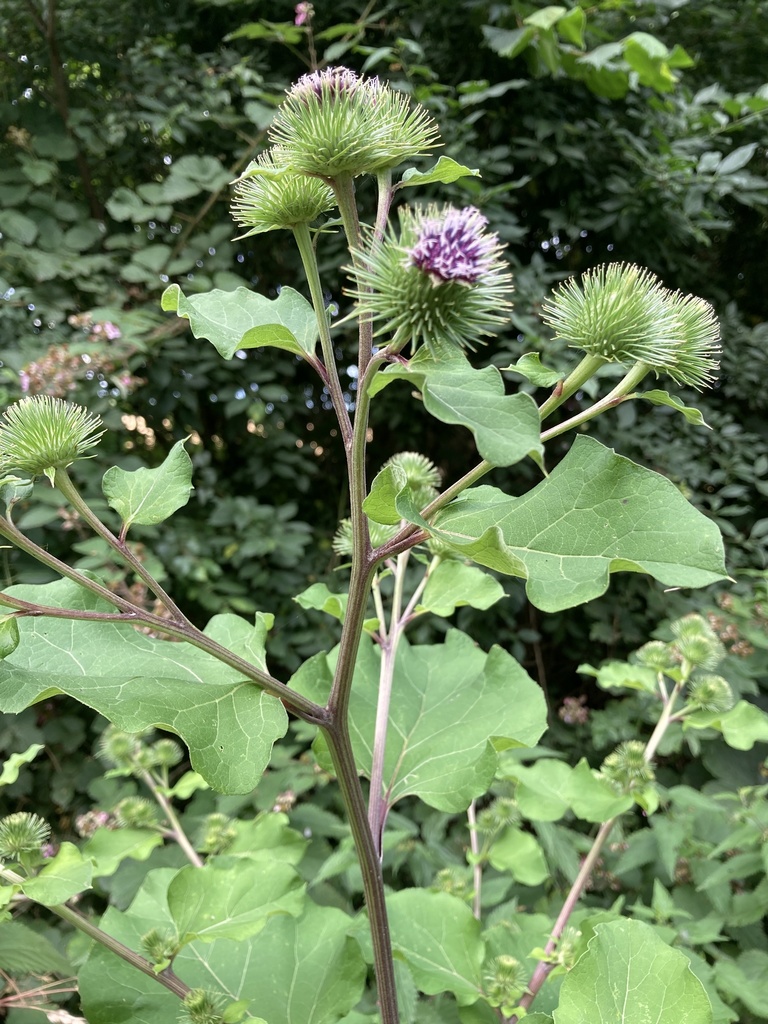
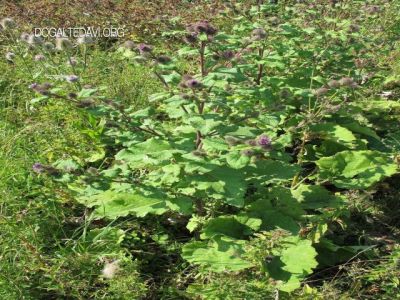
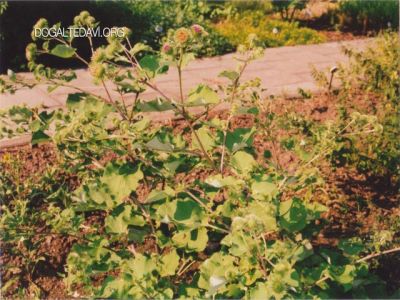
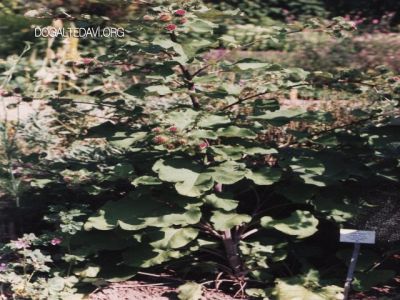
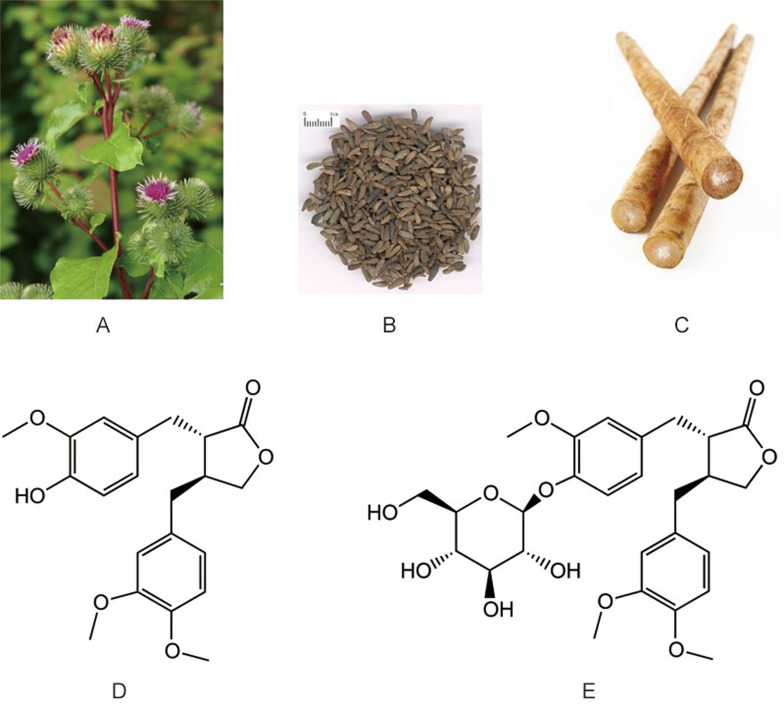
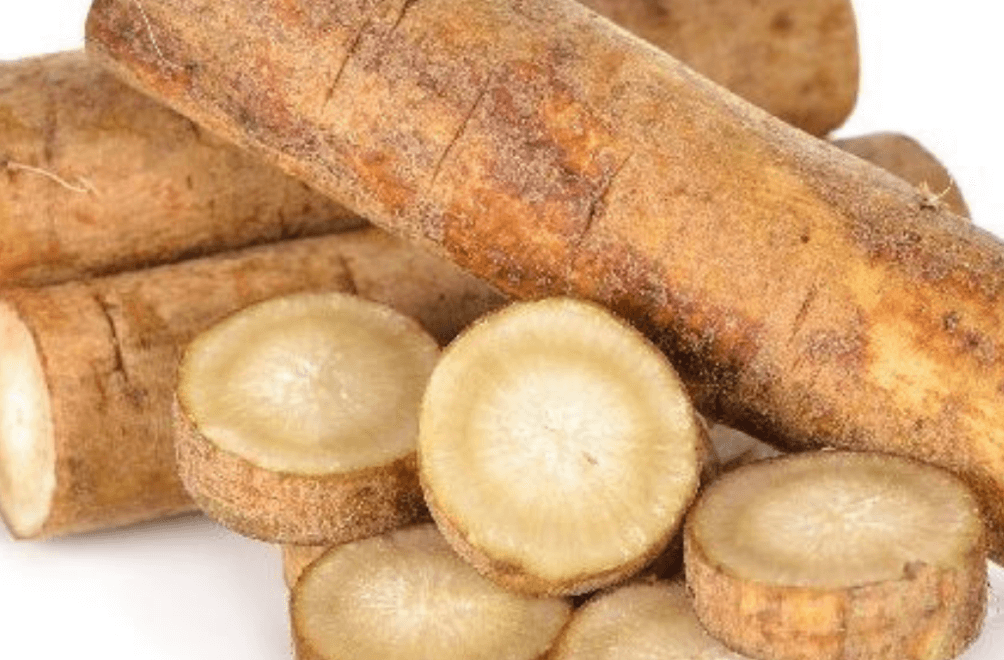
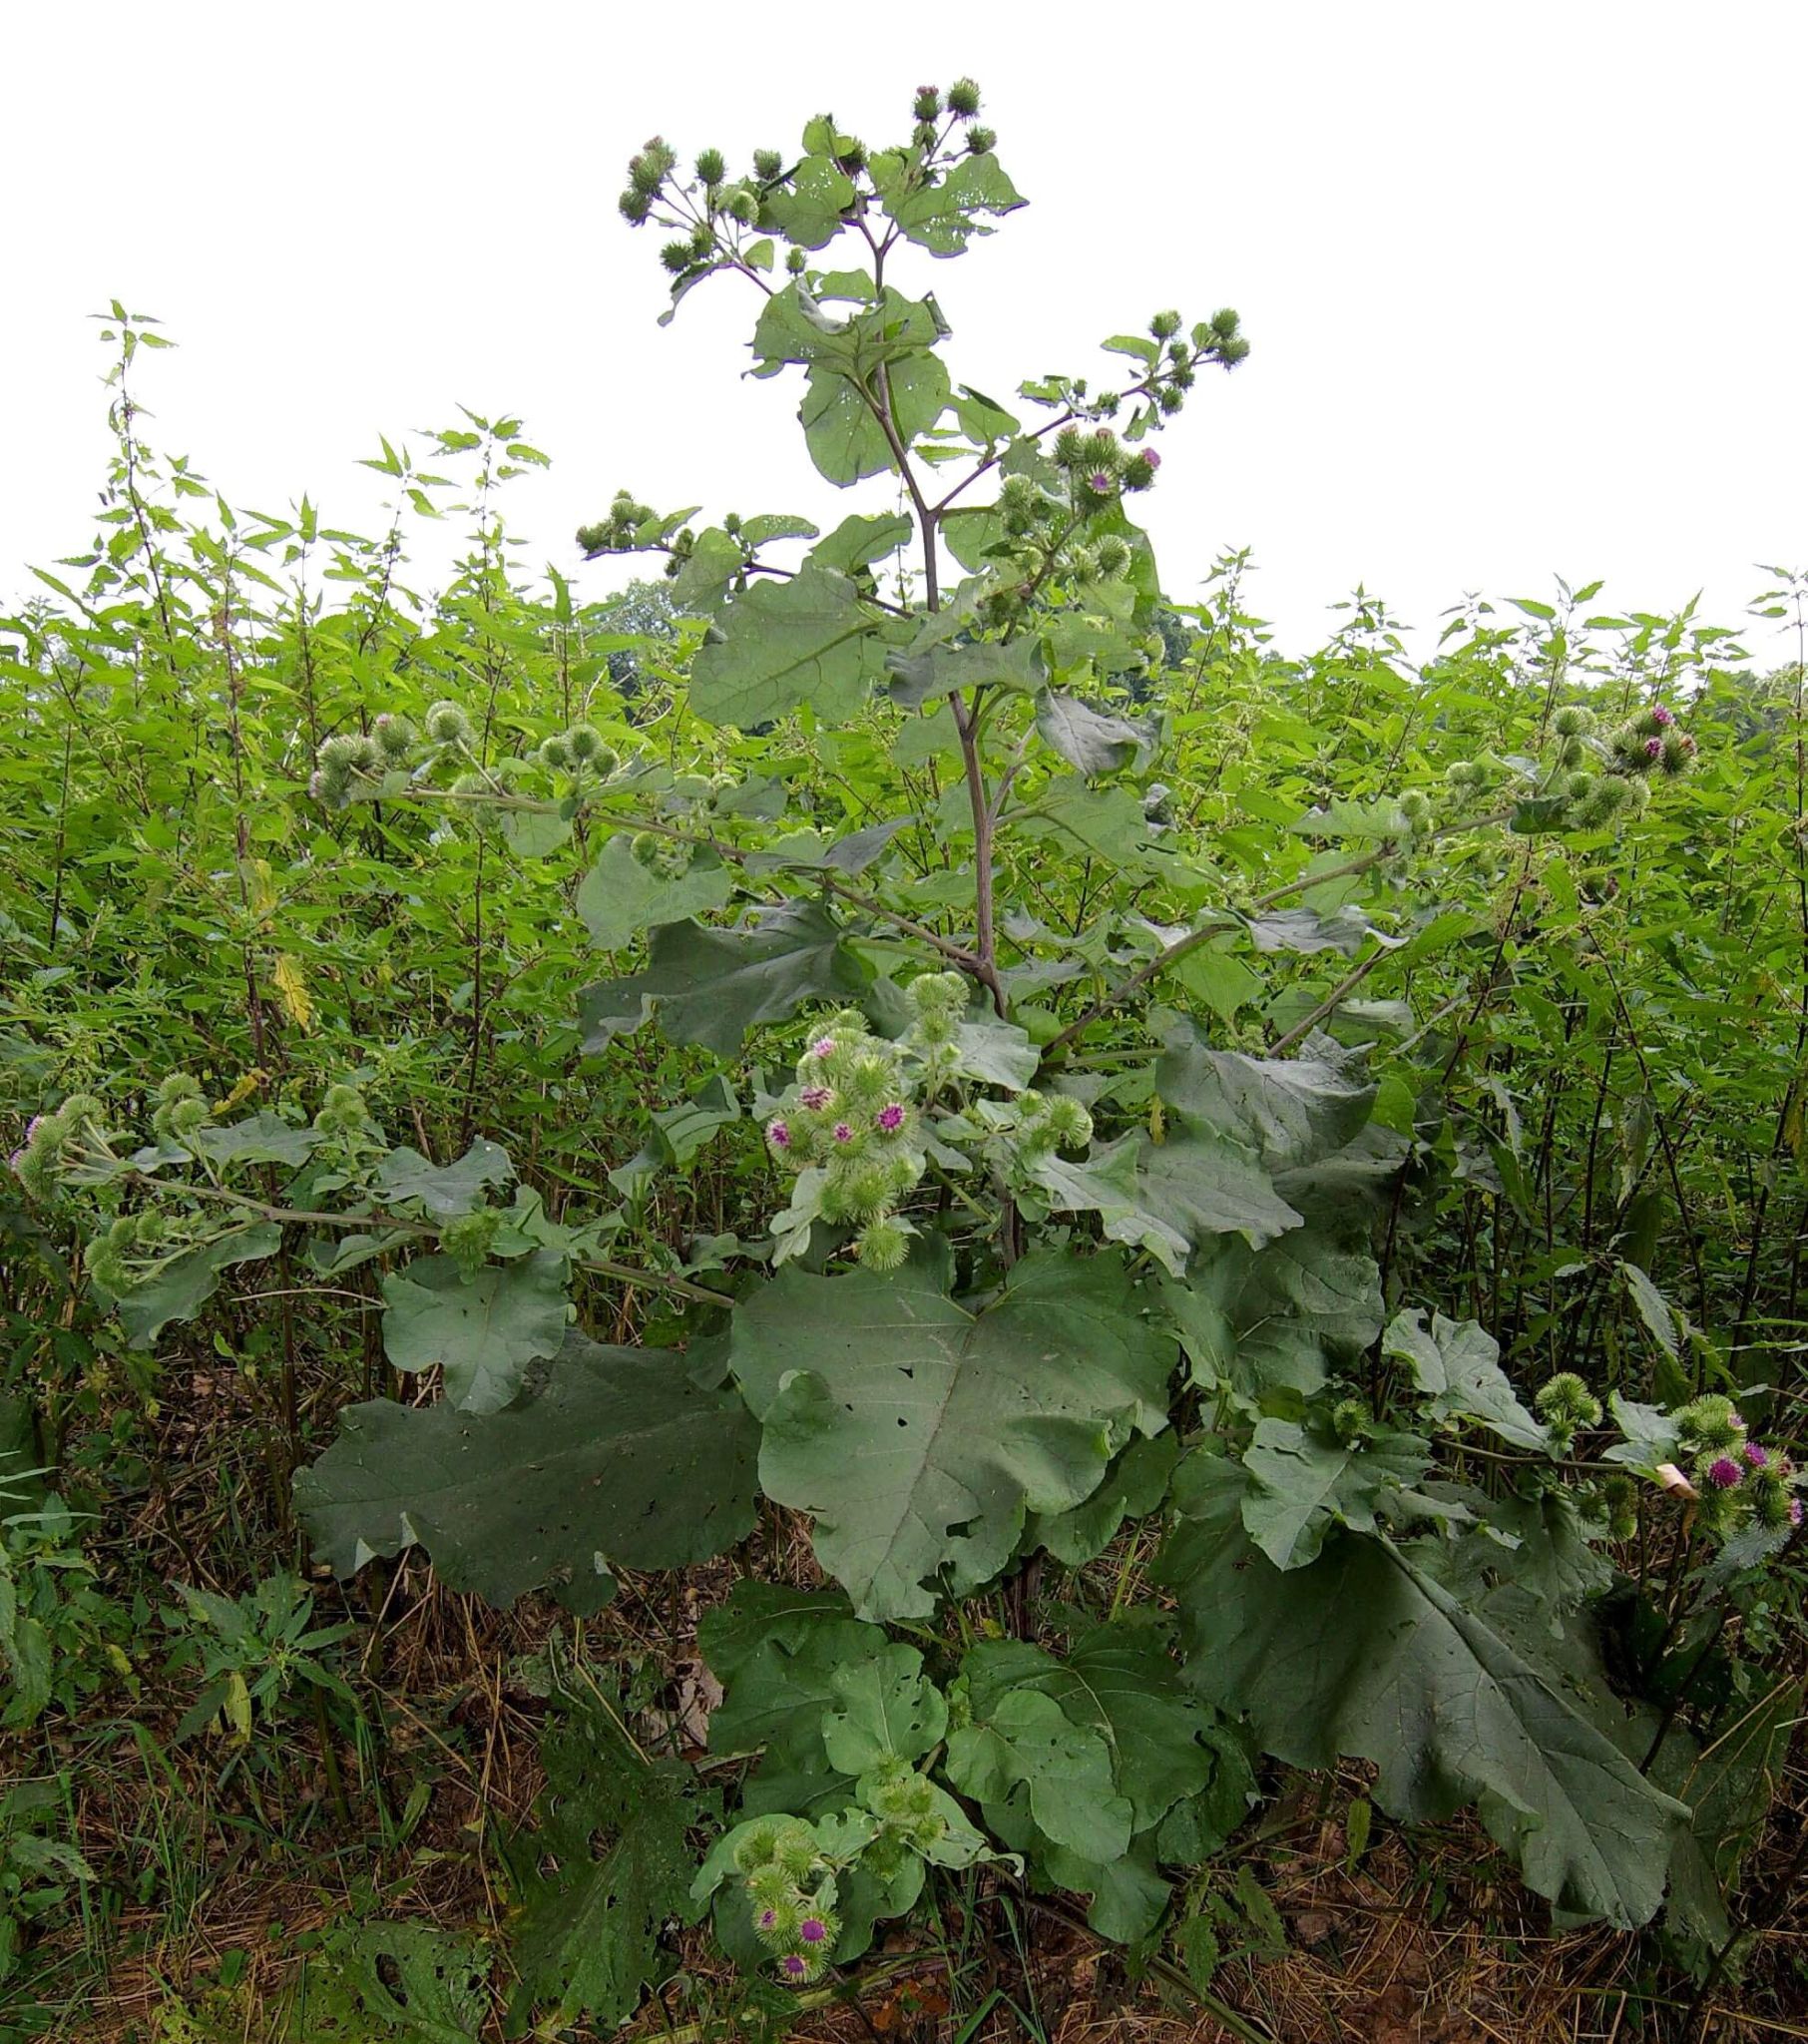
    Botanik; Dulavrat otu 50-180cm boyunda dikine yükselen oldukça sık çatlaşan gövdenin içi dolu dışı kırmızımsı kahve renkli iki yıllık bir bitkidir. Yaprakları yumurta veya kalıp şeklinde olup alt yaprakları oldukça büyük olup 30-50cm büyüklüğünde olabilir ve yukarıya doğru oldukça küçülür. Yaprakların üst yüzeyi açık yeşil, alt yüzeyi tüylü ve kenarları dalgalıdır. Çiçekleri dalların uç kısmına kümelenmiş olup salkım gibi bir aradadır. Her bir çiçek takriben 3-4cm çapında olup ortadaki taç yaprakları boru şeklinde olup kırmızımsı renkte ve kozalak şeklindeki çiçeğin etrafına dizilmiş olan diken gibi kuruduğunda uçları kanca gibi geri dönen kupa yapraklara sahiptir. Kökleri 40cm boyunda 3-5cm çapında oldukça çok yan köklere sahip olup dışı grimsi kahve renkli içi sarımsı beyaz veya beyaz renktedir.

    Yetiştirilmesi; Tohumları Mart’ta Kasa, Yastık veya seralara ekilir ve fideleri Nisan-mayıs aylarında bahçe ve tarlalara ekilir.

    Hasat Zamanı; iki yıllık olan bitkinin kökleri nisan-mayıs veya eylül-ekim aylarında sökülerek çıkarılır ve güneşli gölgelik havalı bir yerde kurutulur. Dulavrat kökü hemen küflenebilir, bu nedenle dikkat etmek gerekir. Kökler kurutulurken sıcaklığın 40˚yi geçmemesi gerekir aksi halde birleşimindeki eterik yağı kaybeder.

    Birleşimindeki; Birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz.
    a) Polisakkarit türevi; Inulin takriben %20-40 arasında olabilir. (Andız ve Yer elmasına bak)
    b) Poliasetilen türevleri: Tridecadien-(1,11)-tetrain-(3,5,7,9,), Tridecen-pentain, Trideca-trien-triin. (Mavi çiçeğe bak)
    c) Kükürtlü Polisakkarit türevleri: Arctinon, Arctinol, Arctinal ve Aretasit.
    d) Acı madde Guaianolittürevleri; Dehydrocostus ve 11,13-Dihydrocostuslacton içerir.
    e) Karbonikasitlerden; Kaffeeasit (kahve asidi), Chlorogenasit, Izochlorogenasit, Butrik asit, Asetik asit, Propinoasit ve Izovalerinasit.
    f) Sabit yağlardan; Oleik-, Limol-, Linolen-, Stearin-, Palmitin-, Capron- ve Oenanthasit içerir.
    g) Ayrıca %0,05-0,19 oranında Uçucu yağ türevleri (Eterik ayağlar) %0,05-0,18 oranında olup en önemlileri; Fenilasetalaldehid, Benzalaldehit, 2-Alkil (C3-C5)- 3 Metoksipirazin ve 2-metoksi-3-metilpirazin içerir.
    h) Ayrıca Tanin, Reçine %15 Proteinler, %30-50Karbonhidratlar ve az miktarda Vitaminler ve de Mineraller içerir.

    Araştırmalar;
    1) Almanya’da 1967 ve Japonya’da 1986 yıllarında yapılan Klinik araştırmalarında Dulavrat kökündeki Polinlerin (Poliastiyler ve Kükürtlü Poliasetilenler) antibiotik özelliğe sahip oldukları (taze olma şartı ile) tespit edilmiştir.
    2) Dr. W. Bohn (1927) Dulavrat otukökünün kan temizleyici olarak ve Deri hastalıklarında; cerahatlı, kabarcıklı yaralara karşı kullanılmış ve olumlu netice elde edilmiştir. (LBH. 2. 931)
    3) LECONTE ve BURNIER (1927) çıban, kanlı çıban ve yanıklardan sonraki şişliklere karşı Dulavrat kökü ekstresi pansuman yaparak ve de çayını içerek hastalarını iyileştirmiştir. (LBH.2.931)
    4) Dulavrat otu ile yapılan son klinik araştırmalara göre Dulavrat otunun antioksidan antiagin olduğu ve Diyabete karşı etkili olduğı belgelenmiştir. Artı içerdiği yüksek orandaki İnulin, polisakaritler ve aminoasitler nedeniyle DOĞAL KOLOJEN olduğu tespit edilmiştir.
    5) İçerdiği yüksek orandaki İnulin nedeniylerde PREBİYOTİKTİR, ayni faydalı bakterilerin besinidir.
    6) OSTEOARTRİT, yani eklem kıkırdakları ve kıkırdak altındaki kemik iltihaplanmasına karşı etkili olduğu belgelenmiştir. Geniş bilgi için PUB MEDE.
    7) Hem Akut Enfeksiyona hemde kronik hastalıklara karşı etkili olduğu yapılan araştırmlar ile belgelenmiştir. Pub med

    Tesir Şekli; Kanı temizleyici, yaraları iyileştirici, antibiotik (mikropları öldürücü), antimikozit (mantaraları yok edici), idrar söktürücü, terletici, hazmettirici, hafif müshil yapıcı, tonik, saçları kuvvetlendirici ve urları yok edicidir.

    Kullanılması;
    a) Komisyon E’nin 22nolu 01.02.1990 tarihli monografi bildirisine göre Dulavrat otukökü başta; mide bağırsak rahatsızlıkları, gut, romatizma, sedef ve deri hastalıklarına karşı ve de kan temizleyici olarak kul-lanılabileceği beyan edilmiştir. Aroma tedavide Dulavrat yaprağı saç ba-kımı, kafa kaşıntısı, ruhya, Ekzem ve Immun zafiyetine karşı kulla-nılır.
    b) Halk arasında; Romatizma, Gut, Ekzema, Sivilce, Akne iyileşmeyen yaralar, çıbanlar, saç dökülmesi ve kepeklenmesi, böbrek taşları, karaciğer ve safra rahatsızlıklarına karşı ve de kan temizleyici olarak kullanılır. Dulavrat otukökü ekstresi ve zeytinyağı karışımı veya Dulavrat kökü ve zeytinyağı ile hazırlanan yağla saç dipleri ovalanır.

    Çay; Kurutulmuş ve ince kıyılmış Dulavrat kökünden 2 kahve kaşığı demliğe konur ve üzerine 300-500ml kaynar su ilave edilir, 5-10dakika demlemeye bırakıldıktan sonra süzülerek içilir. İkinci ve daha etkili metot ise mazerasyondur buda Dulavrat kökünden 2 kahve kaşığı akşamdan demliğe konur üzerine 300-500ml soğuk su ilave edilir. 5-10saat sonra kaynatıldıktan sonra süzülerek içilir.

    Çay Harmanları;

    Gökçek Kan temizleyici çay;
    30g Saparna kökü
    30g Dulavrat kökü
    10g Atkuyruğu
    10g Z. Yasemin sapı
    10g Guayak odunu
    10g Sasafras kökü

    Gökçek Açık yara çayı;
    30g Beşparmak kökü
    20g Papatya çiçeği
    20g Dulavrat kökü
    20g Meşe kabuğu
    10g Karakafes kökü

    Gökçek İltihaplı yara çay;
    30g Sinirli ot
    20g Papatya çiçeği
    20g Adaçayı yaprağı
    10g Meşe kabuğu
    10g Dulavrat kökü
    10g Labada kökü

    Gökçek kan temizleyici çay;
    20g Isırganotu
    20g Guayak odunu
    20g Ardıç kozalağı
    10g Santal odunu
    10g Meyan kökü
    10g Saparna kökü
    10g Dulavrat kökü

    Diskrazi: Vücut sıvısının yapısal bozukluğu. Saç Çayı (saç bakımı için) Bu çaydan 1 yemek kaşığı aynı çay gibi hazırlandıktan sonra süzülerek soğumaya bırakılır ve de süzülerek demi ile saç dipleri ovalanır;
    20g Biberiye yaprağı
    20g Atkuyruğu otu
    20g ısırgan ot ve kökü
    10g Dulavrat kökü
    10g Eğri kökü
    10g Lavanta çiçeği
    10g Çentiyan kökü

    Ar; Taze Dulavrat otukökleri su buharı ile damıtılarak (destilasyon) Eterik yağı elde edilir. Dulavrat otueterik yağı genellikle saç bakımında kullanılır.

    Ekstresi; Dulavrat otukökü Etanol ile Ekstraksiyonu yapılarak Ekstresi elde edilir ve bu ekstrede aynı eterik yağı gibi kullanılır.

    Yağı; Dulavrat otukökü ince ince doğranarak bir şişeye konur ve üzerini örte-cek şekilde zeytinyağı veya tatlı badem yağı ile doldurulur ve güneş gören bir yerde 4-6hafta bekletildikten sonra Dulavrat otuyağı elde edilir. Bu yağda saç diplerini ovalamak için Masaj yapmak ve yaralara sürmek için yani saç bakımı için kullanılır.

    Homeopatide; Dulavrat köklerinden 100gram söküldükten sonra yıkanır ince ince doğrandıktan sonra bir şişeye doldurulur ve üzerine 500ml %50-70lik Alkol doldurulur. Güneş ışnlarından uzakta 4-6hafta bekletildikten sonra süzülerek homeopatide Lappa major adı ile anılan tentür elde edilir ve bu tentürü den günde 3-4defa 10-15damla alınır.

    Hastalığın belirtisi (Sendrom);
    1) Ekzema grimsi kabuklu ise.
    2) Lenf bezleri şişmiş ise.
    3) Çocuklarda görülen ruyhaya (süt içen çocukların başında peydah olan beyazımsı gri kabuklu ekzema) karşı.
    4) Eklem ağrıları şayet aşağıya doğru çekiliyormuş gibi ise.
    5) Rahim sarkması ve idrar sütlü gibi ise.
    6) Koltuk altı pis kokuyorsa Dulavrat otutentürü kullanılır.

    Yan Tesirleri; Bilinen bir yan tesiri yoktur, bazen çok nadiren kişilerde alerjiye sebep olabilir.
  • #2
    Dulavrat otu, Burdock, Pıtrak, Klette, Arctium Lappa L


    Yorum yap


    • #3
      Arctium lappa L. (Dulavratotu) kök çayının diz osteoartritli hastalarda inflamatuar durum ve oksidatif stres üzerine etkileri

      Leila Maghsoumi-Norouzabad, Beitollah Alipoor, Reza Abed, Bina Eftekhar Sedat, Mehran Mesgari-Abbasi, Mohammad Asghari Jafarabadi
      • DOI: 10.1111 / 1756-185X.12477
      Öz


      Amaç: Bu çalışma, dulavratotu kökü çayının diz osteoartriti (OA) hastalarında inflamatuar belirteçler ve oksidatif stres göstergeleri üzerindeki etkisini incelemek için tasarlanmıştır.

      Yöntemler: Tebriz Üniversitesi Tıp Bilimleri Hastaneleri Fiziksel Tıp ve Rehabilitasyon Bölümü'ne sevk edilen diz osteoartritli 50-70 yaş arası 36 hasta (10 erkek ve 26 kadın) çalışma için seçilmiş ve rastgele iki gruba ayrılmıştır. Boy, kilo ve vücut kitle indeksi (BMI) dahil olmak üzere antropometrik ölçümler ölçüldü. 42 günlük çalışma süresi boyunca tüm bireyler için, günde iki kez 500 mg asetaminofen ve günde bir kez 500 mg glukozamin içeren aynı ilaç tedavileri dikkate alındı. Müdahale grubuna yemekten yarım saat sonra günde üç bardak dulavratotu kökü çayı (her biri 2 g / 150 mL kaynamış su içeren) aldı. Kontrol grubuna günde 150 cc kaynamış su içeren üç fincan verildi.

      Bulgular: Sonuçlar , dulavratotu kökü çayının serum IL-6 (P = 0.002), hs-CRP (P = 0.003) ve malondialdehit (P <0.001) düzeylerini önemli ölçüde düşürdüğünü, serum TAC düzeylerini ise (P <0.001) gösterdi. ) ve SOD aktiviteleri (P = 0.009) önemli ölçüde artmıştır. GPX etkinlikleri arttı, ancak önemli ölçüde değil.

      Sonuçlar: Sonuçlar, Arctium lappa L. kök çayının diz osteoartritli hastalarda inflamatuar durumu ve oksidatif stresi iyileştirdiğini ileri sürdü.


      Arctium lappa L. kökünün (dulavratotu) sulu özütü, insan kemik iliğinden türetilen mezenkimal kök hücrelerde kondrojenezi artırır.

      King-Chuen Wu , # 1, 2 Hung-Kai Weng , # 3, 4 Yun-Shang Hsu , 5 Pin-Jia Huang , 5 ve Yang-Kao Wang 4,
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi

      1 Hemşirelik Bölümü, Chang Gung Bilim ve Teknoloji Üniversitesi, Chia-Yi İlçesi, Tayvan
      2 Anesteziyoloji Bölümü, Chang Gung Memorial Hastanesi, Chiayi İlçesi, Tayvan
      3 Ortopedi Bölümü, Ulusal Cheng Kung Üniversitesi Hastanesi, Tıp Fakültesi, Ulusal Cheng Kung Üniversitesi, Tainan Şehri, Tayvan
      4 Temel Tıp Bilimleri Enstitüsü, Tıp Fakültesi, Ulusal Cheng Kung Üniversitesi, Tainan Şehri, Tayvan
      5 Hücre Biyolojisi ve Anatomisi Bölümü, Tıp Fakültesi, Ulus

      İlişkili Veriler

      Öz
      Arctium lappa L. kökü (dulavratotu kökü), geleneksel Çin tıbbında farklı hastalıkların tedavisi için uzun süredir tavsiye edilmektedir. Dulavratotu kökü, anti-oksidatif, anti-inflamatuar, anti-kanser ve anti-mikrobiyal aktivitelere sahiptir. Çalışmanın amacı, sulu dulavratotu kökü ekstraktının mezenkimal kök hücre çoğalmasını ve farklılaşmasını düzenleyip düzenlemediğini aydınlatmaktı.

      Yöntemler
      2D yüksek yoğunluklu kültürde ve 3D mikro kütle pelletlerinde insan kemik iliğinden türetilen mezenkimal kök hücreler, dulavratotu kökü sulu ekstraktının yokluğunda veya varlığında kondrojenik indüksiyon ortamı ve kondral bazal ortam ile işleme tabi tutuldu. Kondrojenik farklılaşmaya, glukozaminoglikanlar boyanarak, SOX9 ve tip II kollajen immün boyama ve SOX9, agrekan ve tip II kollajenin immünonblotlamasıyla erişildi.

      Sonuçlar
      Dulavratotu kökü sulu ekstresinin muamelesi, hMSC'lerin hücre proliferasyonunu arttırdı. Osteojenik ve adipojenik farklılaşma üzerinde önemli bir etkiye sahip değildi, ancak kondrojenik indüksiyon ortamının neden olduğu kondrojenezi önemli ölçüde artırdı. Artış, glukozaminoglikanlar, SOX9 ve tip II kollajen boyanarak ve SOX9, agrekan ve tip II kollajenin 2D ve 3D kültürlerde immünoblotlamasıyla incelendiği üzere doza bağımlıydı. Ek materyallerin varlığında, dulavratotu kökü sulu özütü, TGF-of'ninkine eşdeğer kondrojenik indüksiyon kabiliyeti gösterdi.

      Sonuçlar
      Sonuçlar, Arctium lappa L. kökünün sulu özütünün kondrojenik ortam kaynaklı kondrojenik farklılaşmayı teşvik ettiğini göstermektedir . Dulavratotu kökünün sulu özütü, kondrojenik farklılaşmayı uyarmak için tek başına bile kullanılabilir. Çalışma, dulavratotu kökünün sulu özütünün tedavi amaçlı alternatif bir strateji olarak kullanılabileceğini önermektedir.

      Ek bilgi
      Ek bilgiler , bu belgeye 10.1186 / s12906-020-03158-1 adresinde eşlik etmektedir.

      Anahtar Kelimeler: Arctium lappa L. kökünün sulu ekstraktı , Mezenkimal kök hücreler, Kondrojenik farklılaşma
      Şuraya gidin: Arka fon


      Osteoartrit (OA), eklem kıkırdağının ve altta yatan kemiğin dejenerasyonuna neden olan kronik bir hastalıktır. Şiddetli durumda, kıkırdak parçalanır ve eklem alanı daralır, bu da periartiküler kemik ve yumuşak dokuların açığa çıkmasına neden olur. Bu, eklem içinde ağrı, şişme, şekil bozukluğu ve sakatlığa ve ayrıca çevre dokularda tahrişe neden olabilir [ 1 ]. OA, dünya çapında on milyonlarca insanı etkileyen en yaygın artrit şeklidir. Amerika Birleşik Devleti'nde, Ulusal Sağlık Görüşmesi Araştırmasına göre, 14 milyon kişi semptomatik diz OA'sından muzdariptir [ 2 ]. OA sıklığı yaşla birlikte arttığı için önümüzdeki on yılda OA vakalarının sayısının artması beklenmektedir [ 3 ].

      OA için mevcut tedavi stratejileri şunları içerir: ağrının yönetilmesi, eklem hareketliliğinin iyileştirilmesi, engelliliğin en aza indirilmesi ve eklem fonksiyonunun eski haline getirilmesi. OA için tedavi türleri, ilaçların kullanımını ve farmakolojik olmayan tedavileri içerir. Mevcut farmakolojik seçenekler, ağrı kesiciler ve antiinflamatuvar ilaçlarla sınırlıdır. Bu tür tedaviler etkisiz olabilir ve hatta hastalarda mide problemleri, yüksek tansiyon vb. Gibi ciddi yan etkilere neden olabilir [ 4 ]. Çalışma, Çin bitkisel tıbbının tek başına (CHM) veya OA tedavisi için rutin protokollerle kombinasyon halinde uygulandığını bildirdi [ 5]. CHM, rutin protokollerle birlikte çok fazla yan etki olmaksızın diz OA'nın tedavisinde önemli terapötik etkiye sahip olsa da, bu tedavilerin etkinliğini ve güvenliğini açıklığa kavuşturmak için daha fazla çalışmaya ihtiyaç vardır.

      Son zamanlarda, kök hücre temelli tedaviler dikkati OA tedavisi için denemelere yöneltti. Farklı kök hücreler arasında, yetişkin kökenli insan mezenkimal kök hücreleri (hMSC'ler), çoğunlukla kemik iliği ve yağ dokuları, kemik, kıkırdak ve yağ gibi dokulara farklılaşabilir [ 6 ]. Bu MSC'lerin izole edilmesi kolaydır ve iyi bir çoğalma potansiyeline sahiptir. MSC'ler erken geçişlerde farklılaşma yeteneklerini korurlar ve majör histo-uyumlu antijenlerin düşük ekspresyonu nedeniyle düşük immünolojik ret ortaya çıkarırlar [ 6 , 7 ]. Önceki raporlar, insan MSC'lerinin (hMSC'ler) büyüme faktörü β (TGFβ) 'yi dönüştürerek kondrojenik soy olarak farklılaştırılabileceğini göstermiştir [ 8 , 9], fibroblast büyüme faktörleri (FGF'ler) [ 10 , 11 ], kemik morfogenetik proteinler (BMP'ler) [ 12 - 14 ] ve glukokortikoid ve askorbik asit gibi tamamlayıcı faktörlerin varlığında insülin benzeri büyüme faktörü 1 [ 15 , 16 ] [ 6 , 17 ].

      Başarılı kondrojenik farklılaşma, SRY-box transkripsiyon faktörü 9 (SOX9), tip II kollajen (kollajen II), kıkırdak oligomerik matriks proteini ve agrekan [ 12 , 18 , 19 ] gibi kondrojenik belirteçlerle saptanabilir . Ek olarak, kondrojenik spesifik glikozaminoglikanlar (GAG'ler) alcian blue boyama yoluyla gözlemlenebilir [ 6 , 17]. Yukarıdaki sonuçlar, hMSC'lerin kıkırdak dokusu rejenerasyonu için umut verici bir hücre kaynağı olduğunu göstermektedir. Bununla birlikte, kondrojenik farklılaşmanın indüksiyonunda yukarıdaki sitokinlerin / büyüme faktörlerinin uygulanması da ters etkilere neden olabilir. Örneğin, rekombinant insan IGF-1, FGF-2, BMP-2 ve TGF-uygulamasından sonra hipoglisemi, nöbetler, çene ağrısı ve diğer yan etkiler bildirilmiştir [ 20 - 25 ].

      Dulavratotu olarak da bilinen Arctium lappa L. , Doğu Asya'da ve diğer ülkelerde geleneksel Çin tıbbında (TCM) yüzlerce yıldır tedavi amaçlı kullanılan popüler, yenilebilir çok yıllık bir bitkidir. Dulavratotu kökü eşsiz bir tada ve zengin bir dokuya sahiptir. Birçok ülkede besleyici gıda olarak önerilmiştir. Dulavratotu kökü, bağırsak peristaltizmini ve dışkılamayı destekleyen birçok diyet lifi içerir [ 26 ]. Dulavratotu'nun tedavi amaçlı büyük kısmı köktür, oysa yapraklar [ 27 , 28 ], meyveler ve tohumlar [ 29 , 30 ] gibi diğer kısımlar da farklı amaçlar için kullanılır. Çalışmalar, farklı formüllere sahip dulavratotu kökü özlerinin antiinflamatuar içerdiğini göstermiştir [31 - 34 ], anti-mutajenik [ 35 , 36 ], anti-tümörijenik [ 37 ], anti-oksidan [ 31 , 38 , 39 ] ve anti-bakteriyel ve anti-viral aktiviteler [ 40 - 42 ]. Bu çalışmalar, dulavratotu kökü ekstresinin hastalıkların tedavisinde etkili olduğunu göstermektedir [ 33 , 43 ]. Dulavratotu kökü ekstresi, hastalıklara karşı farklı terapötik etkilere sahip aktif bileşenler içerir [ 44 , 45]. Çok sayıda rapor, yukarıda belirtilen etkileri nedeniyle dulavratotu kökü ekstresinin olası klinik kullanımlarını göstermesine rağmen, mezenkimal kök hücrelerin çoğalmasını ve farklılaşmasını tetikleme yeteneği araştırmaya konu olmamıştır. Önceki çalışma diz OA'si olan hastalar için dulavratotu kökü çayı içtiğini bildirmiş ve anti-inflamasyonda umut verici terapötik sonuçlar göstermiştir [ 33 ]. Ayrıca, TCM'de, otlar genellikle suda pişirilir ve ardından hastalara hastalık tedavisi için verilirdi. Bu sonuçlar, bu sulu çözeltilerin, hastalık tedavisi için faydalı olan etkili bileşenler içerebileceğini göstermektedir. Bu çalışmada, insan kemik iliği kaynaklı mezenkimal kök hücrelerin proliferasyonunun ve farklılaşmasının düzenlenmesinde sulu dulavratotu kökü ekstresinin rolünü araştırdık.

      Şuraya gidin: Yöntemler

      Deneysel sistem
      Birincil insan kemik iliğinden türetilmiş mezenkimal kök hücreler (hMSC'ler) Lonza'dan (Walksville, MD, ABD) satın alındı. Bu hücreler, Dulbecco Modified Eagles Medium (düşük glikoz) (DMEM, HiMedia, Mumbai, Hindistan) ve seçilen lot (ThermoFisher Scientific, Waltham, MA, ABD) ile% 10 fetal sığır serumu (FBS) içeren büyüme ortamında (GM) tutulmuştur. , 100 birim / ml penisilin ve 100 ug / ml streptomisin, nemlendirilmiş bir% 5 CO ile (Keson Labs Smithfield, UT, USA), 37 ° C 'de 2 standart prosedürlere göre bir atmosfer [ 6 , 46 , 47 ]. Ortam, haftada iki kez değiştirildi. Deneylerimiz için sadece erken pasajlar (çoğunlukla P4-P5 ve bazı P6) kullanıldı.

      Farklılaşmanın indüksiyonu
      Osteojenik farklılaşma için hMSC'ler düşük yoğunlukta (3000 hücre / cm ekildi 2 ) ve 10 mM β-gliserofosfat osteojenik indüksiyon ortamı (OIM, GM artı 0.1 uM deksametazon, 50 uM L-askorbik asit-2-fosfat ile muamele edilir. Tüm Merck, Darmstadt, Almanya'dan satın alınmıştır). Ortam, haftada iki kez değiştirildi. 2 haftalık tedaviden sonra hücreler sabitlendi ve alkalin fosfataz aktivitesi (Merck) için boyandı. Adipojenik farklılaşmasına neden olmak için, hMSC'ler 20,000 hücre / cm (yüksek yoğunlukta tohumlanmıştır 2) ve adipojenik farklılaştırma ortamı (AIM, GM, artı 1 μM deksametazon, 0,1 μM indometasin, 250 μM 3-izobutil-1-metilksantin ve 10 μg / ml insan rekombinant insülini ile işlenir. Hepsi Merck'ten satın alınmıştır). O [kırmızı 2 hafta tedaviden sonra, hücreler sabitlenir ve Yağ kullanarak lipid damlacık için boyanmış 6 , 46 ]. Hem osteojenik hem de adipojenik indüksiyon için, GM tedavisi bir kontrol olarak gerçekleştirildi. Kondrojenik farklılaşmasına neden olmak için, hMSC'ler 20,000 hücre / cm (yüksek yoğunlukta tohumlanmıştır 2) ve DMEM düşük glikoz, 0,1 μM deksametazon, 50 μM L-askorbik asit-2-fosfat, 1x İnsülin-Transferrin-Selenyum, 40 μg / ml L-prolin, 1x L-glutamin içeren kondrojenik indüksiyon ortamı (CIM) ile işleme tabi tutulur. (tümü Merck'ten satın alınmıştır) ve 5 ng / ml rekombinant insan Transforming büyüme faktörü β3 (Peprotech, Cranbury, NJ, ABD) [ 6 , 19 , 47 ]. 3D mikro-kütle kültürü için, 3 x 10 5 hücre bir pelet [yapmak için santrifüjlenmiştir 6 , 19 ile ve sulu dulavratotu özü ilave edildi olmadan] ve CIM. Ortam, haftada iki kez değiştirildi. Yüksek yoğunluklu kültür için, hücreler 2 x 10 yoğunluğunda bir gece boyunca ekildi 4 / cm 2 [ 47]. Ertesi gün, ortam, farklı dozajlarda sulu dulavratotu kökü ekstresi ile ve olmaksızın CIM'e geçirildi. Kondrojenik indüksiyon için, 1x İnsülin-Transferrin-Selenyum içeren DMEM ile işleme tabi tutulan hücreler, kontrol olarak gerçekleştirildi. TGF-içermeyen kondrojenik takviyeleri içeren ortam, chon bazal olarak adlandırılır.

      Dulavratotu köklerinin sulu özütü
      Dulavratotu köklerinin sulu ekstresinin kurutulmuş tozunu BioBest Co., Ltd. Taichung, Tayvan'dan satın aldık. BD tozu, stok olarak 100 mg / ml'lik konsantrasyon yapmak için DMEM'de çözündürüldü ve alikotlandı ve - 20 ° C'de saklandı. Kalan toz, oda sıcaklığında desikatörde saklandı.

      MTT testi kullanılarak hücre çoğalmasının ölçülmesi
      3 x 10 de hMSC'ler 4 / cm 2 , bir 96-kuyucuklu plakaya ekilmiştir ve bir sonraki gün, ortam maddesi ve dulavratotu ekstresi olmayan CIM değiştirilmiştir. İşlemden sonra, 3- (4, 5 Dimetiltiyazol-2-il) -2,5-Difeniltetrazolyum Bromür (MTT) reaktifi (Stok: 5 mg / ml, 20 μl / çukur, Merck) her numuneye ilave edildi ve 4 saat inkübe edildi h. MTT çözeltisinin çıkarılmasından sonra, her kuyuya 100 μL DMSO eklendi, karıştırıldı ve 37 ° C'de 30 dakika daha inkübe edildi. Her örneğin absorbansı 570 nm'de bir ELISA plaka okuyucu (uQuant Universal Microplate Reader, Bio-Tek, Winooski, VT, ABD) ile okundu.

      Alcian blue ile glisosaminoglikanların (GAG'ler) boyanması ve miktar tayini
      HMSC'lerin peletleri ve yüksek yoğunluklu kültürü, fosfat tamponlu salin (PBS) içinde durulanmış ve 10 dakika boyunca% 4 paraformaldehit içinde sabitlenmiştir. Peletler, Optimal kesme sıcaklığı (OCT) bileşiğine (Fisher Scientific, Pittsburg, PA, ABD) gömüldü ve dondurularak kesildi (LEICA CM 1950 Cryostat, Leica Biosystems, Buffalo Grove, IL, ABD) 10 um kalınlığında dilimler halinde. Hücreler ve dondurularak kesilmiş örnekler% 1 alsiyan mavisi (Merck) ile boyandı. Daha sonra numuneler, negatif kontrol hücrelerinden mavi renk kaybolana kadar PBS ile durulanmıştır. Alcian mavi lekeli GAG'ler, Wood ve ark. [ 48] değiştirilerek. Kısaca, alsiyan mavisi lekeli GAG'ler, 4 ° C'de gece boyunca 6 mol / L guanidin hidroklorür içinde çözündürüldü. Çözünmüş alcian mavi lekeli GAG'lerin absorbansı, bir spektrofotometre (μQuant Universal Microplate Reader) kullanılarak OD 620 nm'de ölçüldü.

      İmmün boyama ve immünofloresan
      HMSC'lerin peletleri, PBS ile durulanmış, 10 dakika boyunca% 4 paraformaldehit içinde sabitlenmiş ve 10 um kalınlığında kesitler halinde dondurularak kesilmiştir. Yüksek yoğunluklu kültürlenmiş hMSC'ler, PBS ile çalkalandı ve 10 dakika boyunca% 4 paraformaldehit ile sabitlendi. Hem yüksek yoğunluklu kültür hem de dondurularak kesilmiş numuneler PBS ile durulanmış, oda sıcaklığında 1 saat boyunca SuperBlock bloke edici tamponda (Thermo) ıslatılmış, ardından birincil antikorlarla (SOX9, 1: 200, kat. No # GTX109661; kolajen II, kat no # GTX20300; her iki antikor da gece boyunca 4 ° C'de GeneTex, Irvin, CA, ABD'den satın alındı. Daha sonra örnekler floroforlarla konjuge sekonder antikorla inkübe edildi (1: 400, Alexa Fluor 488-konjuge keçi anti-tavşan IgG, kod No. 111–545-003, SOX9; 1: 400, Rodamin konjuge keçi anti-tavşan IgG, kod No. 111-025-003, kolajen II'ye. Her iki antikor da Jackson ImmunoResearch Laboratories, INC, West Grove, PA, ABD'den satın alındı. Çekirdekler 4 ', 6-diamidino-2-fenilindol (DAPI) ile boyandı. Örnekler sulu montaj solüsyonuna (Fluomount-G ™, Electron Microscopy Science, Hatfield, PA, ABD) monte edildi ve immünofloresan görüntüleri Olympus epifloresan mikroskobu (Olympus IX-81, Olympus, Tokyo, Japonya) ile alındı.

      Western blot analizi
      İşlemden sonra, 2D yüksek yoğunluklu kültürdeki hücreler, soğutulmuş PBS ile durulanmış ve proteaz inhibitörü ve fosfataz inhibe kokteylleri (ThermoFisher Scientific) içeren radyoimünopresipitasyon deney tamponu (RIPA, ThermoFisher Scientific) ile lize edilmiştir. Hücre lizatı, 4 ° C'de 12000gx'de santrifüjlendi ve süpernatan toplandı ve - 80 ° C'de saklandı. Her numunedeki protein miktarı, üreticinin talimatlarına göre bir bisinkoninik asit protein tahlil kiti (Bio-Rad, Hercules, CA, ABD) ile ölçülmüştür. On ila yirmi mikrogram protein, SDS-PAGE ile çözündürüldü, ardından poliviniliden (PVDF) membran (Pall Corporation, Port Washington, NY, ABD) üzerine elektroforez uygulandı. PVDF membranı, oda sıcaklığında SuperBlock engelleme tamponuna (ThermoFisher Scientific) batırıldı ve ardından aşağıdakileri içeren birincil antikorlarla inkübe edildi: 4 ° C'de anti-SOX9, 1: 2000 ve anti-kollajen II 1: 2000. Membran daha sonra Tris-Tamponlu Saline-Tween 20 (TBST) ile durulanmış ve immünokompleksler, at turpu peroksidazı (kod No. 111-035-003 ile konjuge edilmiş ikincil antikor (1: 4000; keçi-anti-tavşan) ile inkübe edilmiştir. , Jackson ImmunoResearch) SOX9 ve kolajen II için. PVDF membranı üzerindeki immünokompleksler, geliştirilmiş kemolüminesans reaktifi (Bio-Rad) ile inkübe edildi ve X-ışını filmi (Fujifilm, Tokyo, Japonya) üzerinde florgrafi ile görselleştirildi.

      Dulavratotu kökü sulu ekstresinin yüksek performanslı sıvı kromatografisi ile taranması
      BD kök sulu ekstraktındaki kimyasal bileşenleri taramak için yüksek performanslı sıvı kromatografisi (HPLC) kullanıldı. HPLC, bir Agilent Technologies 1200 serisi (Agilent, Santa Clara, CA, ABD) kullanılarak gerçekleştirildi. Dulavratotu kökü tozunun 10 mg sulu özütü, 1 ml deiyonize su içinde çözüldü ve örnek, InertSustain C18 kolonuna (250 × 4.6 mm, 5 μm) (GL Sciences, Nakano-ku, Tokyo, Japonya) sokuldu. Koşullar, asetonitril ve% 0.1 asetik asit karışımı kullanılarak elüsyon modu gradyanında 1.0 mL / dakikalık bir akış oranını içeriyordu. Gradyan koşulları, ilk 10 dakikada asetonitril (% 25) ve% 0.1 asetik asit (% 75), ardından sonraki 10 maden için asetonitril (% 50) ve% 0.1 asetik asit (% 50) ve asetonitril (% 25) ve Son 10 maden için% 0.1 asetik asit (% 75). Sulu numunenin enjeksiyon hacmi 10 uL ve 30 dakikalık bir çalışma süresi idi.

      İstatistik
      Ölçülen sonuçlar, en az üç bağımsız deneye dayalı ortalama ± standart ortalama hata (SEM) olarak rapor edilir. İstatistiksel analiz varyans analizi (ANOVA) ile yapıldı ve gruplar arasındaki önemli farklılıkları belirlemek için Tukey Post Hoc Testi yapıldı. P  <0.05 olduğunda anlamlılık kabul edildi .

      Şuraya gidin:

      Sonuçlar
      İlk sorumuz dulavratotu kökünün (BD) sulu özütünün hMSC hücre canlılığını etkileyip etkilemediğiydi. HMSC'ler, 96 oyuklu bir plakada 2000 hücre / oyuk yoğunlukta tohumlandı ve serumsuz ortam (Kontrol, insülin-transferrin-selenyum içerir), BD 100 (Kontrol artı BD 100 μg / ml), chon bazal ile işleme tabi tutuldu. , chon bazal + BD (100 μg / ml), CIM ve CIM + BD (100 μg / ml). 7. günde, hMSC'ler tedavi olmaksızın uzatılmış fibroblast morfolojisi gösterdi (Şek. 1a). Tek başına BD varlığında, kayıp kanıtı olmaksızın artan sayıda hücre ile uzatılmış morfolojiye sahiptiler (Şek. 1b). Chon bazal veya CIM ile muameleden sonra, hücrelerin morfolojisi, tedavi edilmeyen hücrelere göre yuvarlak ve daha kısa hale geldi. CIM ile tedaviden sonraki morfoloji chon bazal ile benzerdi. Chon bazal ile kombine BD ile tedaviden sonraki morfoloji, CIM ile benzerdi (Şek.​(Şekil 1a).1a). 1 günlük tedaviden sonra hücreler, MTT testi ile ölçüldüğü üzere tedaviden bağımsız olarak aktivitelerini korudu. 3 günlük tedaviden sonra, ilgili 1. gün tedavilerine kıyasla tüm gruplarda hücre proliferasyonunda önemli bir artış gözlemledik. 7 gün sonra, hücre proliferasyonu, 1. gün ve 3. gün ile ilgili tedavilere kıyasla tüm tedavilerde daha da artmıştır (Şek.​(Şekil 1b).1b). Bu sonuçlar, BD'nin hücre ölümüne neden olmadan hMSC hücre büyümesini desteklediğini göstermektedir. BD, kondrojenik indüksiyon sırasında hücre morfolojisini değiştirmez.


      Şekil 1
      Arctium lappa L.'nin ( Dulavratotu , BD) sulu ekstresinin mezenkimal kök hücre büyümesi üzerindeki etkileri . İnsan kemik iliğinden türetilen mezemşimal kök hücreler (hMSC'ler), 16 saat boyunca kontrol ortamı varlığında 2000 hücre / oyuk yoğunlukta 96 oyuklu bir plakada tohumlandı. Hücreler, 1, 3 ve 7 gün boyunca kontrol, BD 100 (100 ug / ml), chon bazal, chon bazal + BD 100, kondrojenik indüksiyon ortamı (CIM) ve CIM + BD 100 ile tedavi edildi. a Faz kontrast mikroskobu ile hücrelerin morfolojik değişiklikleri. b Hücre canlılığı, MTT testi kullanılarak ölçüldü. Sonuçlar, üç bağımsız deneyin ortalama ± standart ortalama hatası (SEM) olarak sunulur. *,  Gün 1 ile ilgili tedaviye karşı P <0.05; #, P <0.05 gün 3 ile ilgili tedaviye karşı. Ölçek çubuğu: 100 μm

      Sonraki soru, BD'nin hMSC'nin farklılaşma yeteneğini değiştirip değiştirmediğiydi. Bu amaçla, hMSC'ler düşük yoğunlukta (3000 hücre / cm tohumlanmıştır 2 osteojenik farklılaşması için) ve yüksek yoğunlukta (20,000 hücre / cm 2 adipojenik ve kondrojenik farklılaşması için) [ 6 , 46 , 47 ]. Kontrole ek olarak, hücreleri 14 gün boyunca farklılaşma indüksiyon ortamı (OIM, AIM ve CIM) ve farklılaşma indüksiyon ortamı artı BD (100 μg / ml) ile tedavi ettik. Hücre farklılaşması, Pittenger ve ark. [ 6]. Osteojenik indüksiyondan sonra, mor renkte önemli bir yüksek alkalin fosfataz aktivitesi lekelenmesi gözlemledik. BD varlığı, OIM ile indüklenen osteojenik farklılaşmayı hafifçe arttırdı (Şek. 2a, üst paneller, Şek. ​Şekil 2b).2b). AIM tedavisi, yağ kırmızısı O boyamasının yansıttığı gibi sitozolde lipid damlacıklarının birikimini önemli ölçüde artırırken, BD'nin varlığı, AIM'nin neden olduğu adipojenik farklılaşmayı değiştirmedi (Şek.​(Şekil 2a,2a, orta paneller, Şek. 2c). İlginç bir şekilde, CIM tedavisi, Alcian mavisi lekeli GAG'lerin miktarı ile teyit edildiği üzere kondrojenik farklılaşmayı arttırdı. BD'nin varlığı, CIM kaynaklı kondrojenik farklılaşmayı önemli ölçüde artırdı (Şek.​(Şekil 2a,2a, alt paneller, Şek. ​Şekil 2d).2d). Bu sonuçlar, BD'nin hMSC'lerin kondrojenezini arttırdığını, ancak osteojenez veya adipojenezin güçlendirici etkilere sahip olmadığını göstermektedir.


      BH'nin hMSC'lerin farklılaşma yeteneği üzerindeki etkileri. HMSC'ler 3 x 10 bir yoğunlukta 16 saat ekildi 3 hücre / cm 2 osteojenik uyarımı için ve 2 x 10 de 4 hücre / cm 2 adipojenik ve kondrojenik indüksiyon için. Hücreler 14 gün boyunca BD (100 ug / ml) varlığında veya yokluğunda kontrol, OIM, AIM ve CIM ile tedavi edildi. Hücreler sabitlendi ve osteojenik farklılaşma için alkalin fosfataz aktivitesi boyandı, bkz. Üst paneller. Yağ kırmızısı O boyama adipojenik farklılaşma için kullanılmıştır, orta panellere bakınız. Alcien mavisi boyama, kondrojenik farklılaşma için kullanıldı, bkz. Alt paneller. Ölçek çubuğu: 100 μm. bd Alkalin fazfaz ( b ), Yağ kırmızısı O (c ) ve ( d ) alcian mavi boyama ImageJ yazılımı ile yapıldı. Sonuçlar, üç bağımsız deneyin ortalama ± SEM'i olarak sunulur. *, Kontrole karşı P <0.05; #, P <0.05 ile Chon

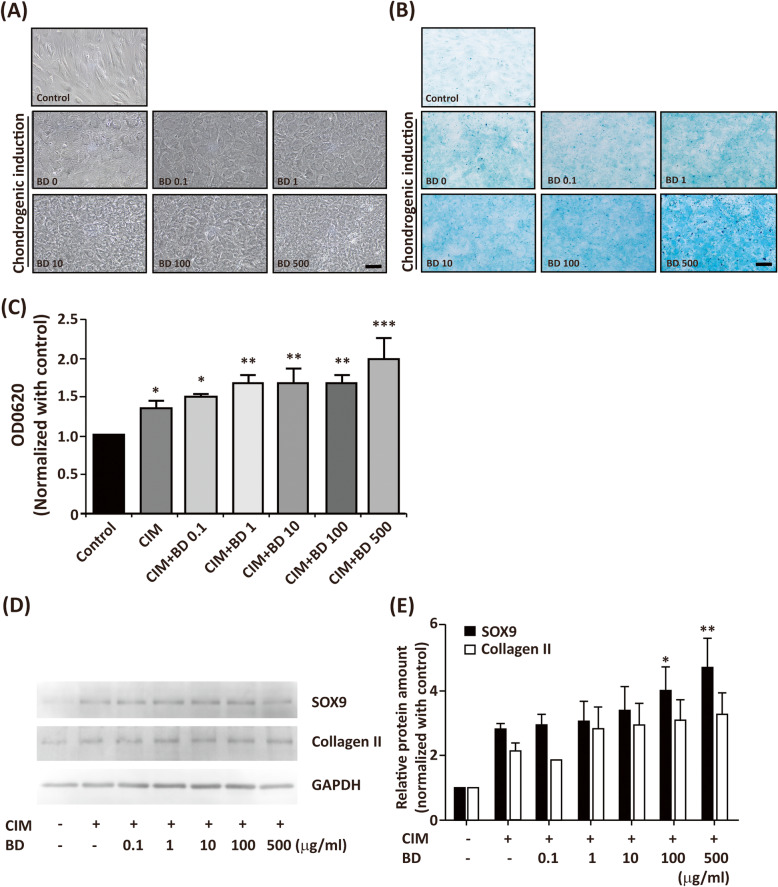
      BD'nin kondrojenezi destekleyip desteklemediğini daha da doğrulamak için, BD'nin CIM kaynaklı kondrojenezin güçlendirilmesindeki doza bağımlılığını test ettik. HMSC'ler 20000 hücre / cm tohumlanmıştır 2 dozajlarda Behçet ya da yokluğunda CIM varlığında, 0, 0.1, 1, 10, 100, ve 500 ug / ml olmuştur. Kondrojenik farklılaşma, Alcian mavisi boyama ile değerlendirildi. İşlem yapılmadan hMSC, Şekil 2'de gösterildiği gibi fibroblast benzeri bir morfoloji sergiledi. 3a. Kondrojenik indüksiyondan sonra, hMSC'nin morfolojisi iş milinden poligonal veya yuvarlak şekle değişti. BD varlığında BD ile tedavi edilen hücrelerin morfolojisi CIM ile tedavi edilen hücrelerinkine benzerdi. Kondrojenik indüksiyon olmadan hücreler çok az GAG üretti. Kondrojenik indüksiyondan sonra, GAG miktarı önemli ölçüde arttı. BD varlığında, doza bağlı olarak CIM ile indüklenen kondrojenik farklılaşmayı arttırdı (Şek. 3M.Ö). BD'nin CIM kaynaklı kondrojenik farklılaşmayı artırıp artırmadığını daha fazla karakterize etmek için, SOX9 ve kolajen II'nin protein seviyelerini incelemek için Western blot analizi gerçekleştirdik. SOX9 ve kolajen II'nin CIM ile indüklenen protein seviyelerini bulduk. BD dozunun birlikte tedavisi, CIM ile indüklenen SOX9 ve kollajen II protein seviyelerini artırdı (Şek.​(Şekil 3d,3d, e; Ek Şekil 1 ). Yukarıdaki bulgular, BD'nin CIM ile indüklenen kondrojenezle ilişkili markör proteinlerini geliştirdiğini göstermektedir.


      BD, yüksek yoğunluklu kültürlerde CIM kaynaklı kondrojenezi geliştirir. HMSC'ler, farklı BD dozajlarıyla (0, 0.1, 1, 10, 100, 500 ug / ml) CIM yokluğunda veya varlığında 14 gün boyunca 2 x 10 hücre / cm2 yoğunlukta tohumlandı. a Faz kontratlı mikroskopi ile morfolojik değişiklikler. b Alcian mavisi boyama yoluyla kondrojenik farklılaşma. c Alcian mavisi lekeli glikozaminoglikanlar (GAG'ler) ekstrakte edildi ve absorbans OD 620 nm'de okundu. Sonuçlar, en az 5 bağımsız deneyden ortalama ± SEM olarak sunulur. *, P <0.05, **, P <0.01, ***, P <0.001 kontrole karşı. Ölçek çubuğu: 100 μm. dhMSC'ler, 20000 hücre / cm'de tohumlandı ve 7 gün boyunca BD'nin yokluğunda veya varlığında (0.1-500 ug / ml) CIM ile işleme tabi tutuldu. Hücreler hasat edildi ve SOX-9 ve tip II kolajenin protein seviyeleri Westerm blot ile analiz edildi. İşlem görmemiş hücrelerden alınan hücre lizatı kontrol olarak kullanıldı. e ( d ) ' nin kantifikasyon sonuçları . Sonuçlar, iki ila üç bağımsız deneyin ortalama ± SEM'i olarak sunulur. *, P <0.05, **, P <0.01 kontrole karşı

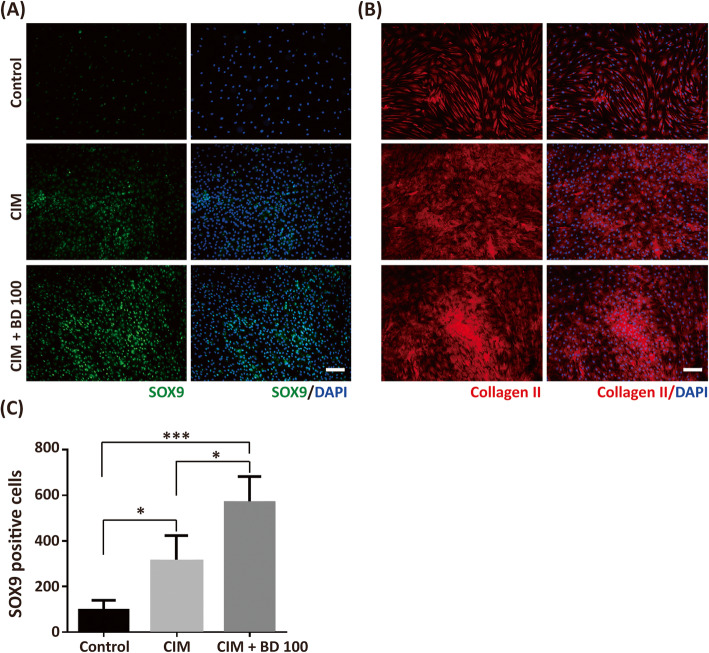
      7 günlük bir tedaviden sonra kondrojenezin güçlendirilmesinde BD'nin rolünü anlamak için nükleer lokalize kondrojenik transkripsiyon faktörü SOX9 ve kıkırdak matriks kolajen II [ 19 , 49 ] gibi kondrojenik belirteçlerin immünofloresan boyamasını gerçekleştirdik . Şekil 2'de gösterildiği gibi, kontrol grubu çok az nükleer lokalize SOX9 pozitif hücreye sahipti. 4a ve c. CIM tedavisi, nükleer lokalize SOX9 hücrelerinin sayısını önemli ölçüde artırdı. BD'nin (100 μg / ml) CIM ile birlikte işlenmesi, CIM kaynaklı nükleer lokalize SOX9 sayısını daha da artırmıştır. Kontrolde sadece bazal kollajen II miktarlarının bulunduğu kollajen II boyamasından da benzer sonuçlar elde edildi. CIM işlemi, kolajen II boyamasını arttırdı. BD'nin birlikte tedavisi, CIM ile indüklenen kolajen II boyamasını teşvik etti (Şek.​(Şekil 44b).


      BD, yüksek yoğunluklu kültürlerde CIM kaynaklı kondrojenik belirteçleri geliştirir. HMSC'ler, CIM ve CIM artı BD 100 (100 ug / ml) yokluğunda veya varlığında 7 gün boyunca 2 x 10⁴ hücre / cm2 yoğunlukta tohumlandı. Hücreler sabitlendi ve ( a ) SOX9 ve ( b ) tip II kolajen (Kolajen II) ile boyandı . Çekirdekler, DAPI ile karşı boyandı. c SOX9 pozitif olarak boyanan hücreler, DAPI pozitif hücrelerde sayıldı. Sonuçlar, dört bağımsız deneyden ortalama ± SEM olarak sunulur. *, P <0.05; ***, P <0.001. Ölçek çubuğu: 100 μm

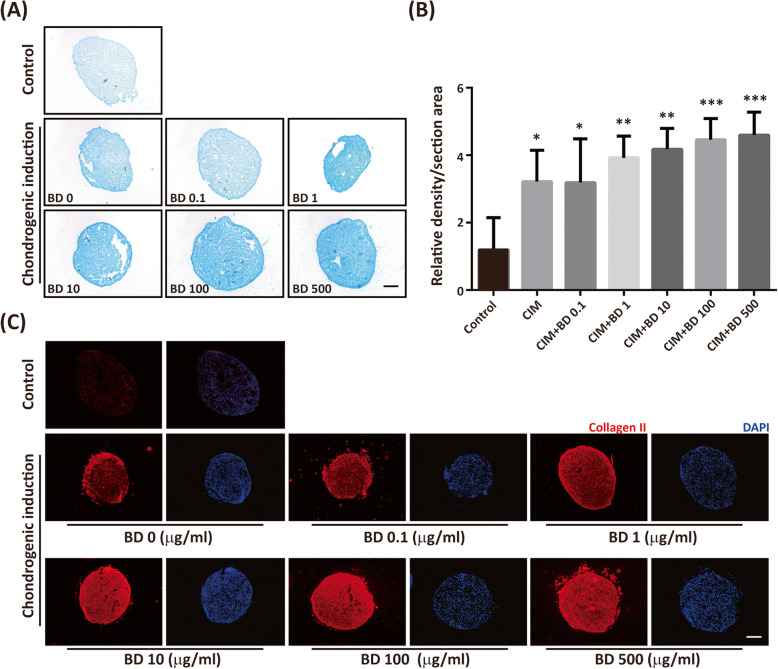
      BD, CIM ile birlikte yüksek yoğunluklu 2 boyutlu (2D) bir kültür sisteminde CIM kaynaklı kondrojenik farklılaşmayı destekleyebilse de, bu sonuçlar kondrojenez genellikle 3 boyutlu (3D) bir ortamda gerçekleştiği için kondrojenezin temsilcisi olmayabilir. İn vivo kondrojenezi taklit etmek için, bir 3D mikromas pelet kültürü gerçekleştirdik. Mikro kütle peletleri, farklı dozajlardaki BD ile birlikte CIM ile ve CIM olmadan 14 gün süreyle işleme tabi tutuldu. Mikro kütle topakları dondurularak kesildi ve 14 günlük muameleden sonra Alcian mavisi ile boyandı. Sonuçlar, ImageJ yazılımı kullanılarak analiz edildi ve nicelendirildi. CIM işlemi olmadan, kontrol mikro kütle peletlerinde sadece küçük Alcian mavi lekeli GAG'ler gözlendi. CIM tedavisi ile GAG ​​miktarı önemli ölçüde arttı. BD ile birlikte tedavi, CIM kaynaklı GAG miktarını artırdı (Şekil. 5a, b). Artış, BD dozuna bağlıydı. Kıkırdak matriksi kolajen II'nin boyanmasıyla da benzer sonuçlar elde edildi. CIM varlığı, tip II kollajen miktarını önemli ölçüde artırdı. BD'nin varlığı, CIM kaynaklı kondrojenezi artırdı (Şekil. 5c).


      Şekil 5
      BD, 3D mikro kütle kültüründe CIM kaynaklı kondrojenik farklılaşmayı geliştirir. 3 x 10 5 hücre 15 ml konik bir tüp içine yerleştirilmiş ve verim, Micromass etmek üzere santrifüje edildi. Hücreler, 14 gün boyunca BD'nin (0, 0.1, 1, 10, 100, 500 ug / ml) yokluğunda veya varlığında CIM ile ve olmadan tedavi edildi. a Her tüpteki hücre topağı dondurularak kesildi ve Alcian mavisi ile boyandı. b Alcian mavisi boyalı GAG'ler, Image J yazılımı kullanılarak ölçüldü. c Kriyoseksiyon peletleri sabitlendi ve tip II kolajen (Kolajen II) ile immüno-lekelendi. Çekirdekler, DAPI ile karşı boyandı. Sonuçlar, dört bağımsız deneyden ortalama ± SEM olarak sunulur. *, P <0.05, **, P <0.01, ***, P <0.001 ve kontrole karşı

      Kondrojenik farklılaşmanın indüksiyonu için, kimyasal takviyeler ve TGF-[ 6 , 19 ] içeren kimyasal tanımlı kondrojenik indüksiyon ortamı gerçekleştirdik . Önceki çalışmalar, TGF-β'nın MSC'lerin gelişimi sırasında kondrojenik olayları düzenleyen ve kondrojenezini uyaran güçlü bir kondrojenik indükleyici olduğunu göstermiştir [ 9 , 11 ]. TGF-β'nın kondrojenik farklılaşmayı teşvik etmedeki önemi, artan SOX9 ve GAG ​​birikiminden ve agrekan ve kollajen II sentezinden anlaşılmaktadır [ 49 ].

      BD'nin tek başına kondrojenik farklılaşmaya yol açıp açmadığını açıklığa kavuşturmak için aşağıdaki chon bazal ortamı hazırladık: TGF-içermeyen CIM. HMSC'ler 20000 hücre / cm tohumlanmıştır 2 yokluğunda ve BD varlığı (100 ug / ml), ve BD olmayan chon bazal (100 ug / ml) ile veya olmadan ve BD CIM (100 ug / ml). Kondrojenik farklılaşmaya Alcian mavi boyama ile erişildi. Kontrol hücreleri arasında az miktarda boyanmış GAG bulduk. Tek başına BD tedavisi, kontrol hücrelerinde GAG'lerin boyanmasını hafifçe arttırdı. Hem kondral bazal hem de CIM, GAG miktarını önemli ölçüde artırdı. BH'nin varlığı, hem kondral bazal hem de CIM'in etkisini artırdı (Şek. 6a, b). Kondral bazal ortam artı BD ile tedavi, CIM ile aynı miktarda GAG'ı indükledi.


      Şekil 6
      BD tedavisi, kondrojenik farklılaşmayı indüklemek için yeterlidir. HMSC'ler 2 x 10 bir yoğunlukta tohumlanmıştır 4 hücre / cm 2 yokluğunda kondral bazal ortam, CİM varlığı ve 14 gün CIM + BD (100 ug / ml). Hücreler sabitlendi ve Alcian mavisi ile boyandı. a Kondrojenik farklılaşmış hücrelerin temsil edilen görüntüleri. b Alcian mavi lekeli GAG'ler ekstrakte edildi ve optik yoğunlukları OD 620 nm'de okundu. Sonuçlar, üç bağımsız deneyden ortalama ± SEM olarak sunulur. *, P  <0.05, **, P  <0.01, ***, P  <0.005 kontrole karşı. c 3 × 10 5hücreler, 15 ml'lik konik bir tüpe yerleştirildi ve mikro kütle elde etmek için santrifüjlendi. Hücreler, 14 gün boyunca kondral bazal ortam, CIM ve CIM + BD (100 ug / ml) yokluğunda veya varlığında tedavi edildi. Her tüpteki hücre topağı dondurularak kesildi ve Alcian mavisi ile boyandı. d Alcian mavisi boyalı GAG'ler, Image J yazılımı kullanılarak ölçüldü. *,  belirtildiği gibi ilgili kontrollere karşı P <0.05'i temsil eder. Ölçek çubuğu: 100 μm. e hMSC'ler 2 x 10 bir yoğunlukta tohumlanmıştır 4 hücre / cm 2kondral bazal besiyerinin yokluğunda veya varlığında, BD 100 (100 μg / ml), chon bazal artı farklı dozlarda TGF-β (0,1–5 ng / ml), chon bazal artı çeşitli dozlarda BD (1 ila 500 μg / ml) 7 gün süreyle. Hücreler sabitlendi ve Alcian mavisi ile boyandı. f Alcian mavi lekeli GAG'ler ekstrakte edildi ve optik yoğunlukları OD 620 nm'de okundu. Sonuçlar, üç bağımsız deneyden ortalama ± SEM olarak sunulur. *, P  <0.05, **, P  <0.01, ***, P <0.001 kontrole karşı. Ölçek çubuğu: 100 μm

      3D mikro kütle peletleri kullanılarak benzer sonuçlar bulundu. BH'nin varlığı, kondral bazal ve CIM'in etkisini önemli ölçüde artırdı (Şek.​(Şekil 6c,6c, d). Bu sonuçlar, BD'nin kondrojenezin indüksiyonu ile ilgili olarak TGF-'ya eşdeğer olduğunu ima etti. BD tedavisinin tek başına kondrojenik farklılaşmayı TGF-β ile kıyaslandığında eşdeğer kabiliyete sahip olup olmadığını daha fazla incelemek için, chon'da farklı dozlarda TGF-β (0,1 ila 5 ng / ml) ve BD (1 ila 500 μg / ml) uyguladık. kondrojenik farklılaşmayı indüklemek için bazal ortam. 1 ng / ml'nin üzerindeki TGF-β tedavisi, kondrojenik farklılaşmayı indüklemek için yeterliyken, 100 μg / ml'nin üzerindeki dozajda BD, kondrojenik farklılaşmayı indükleyebilir. BD'nin 100 μg / ml'de tedavisi, kondrojenik farklılaşmayı indüklemek için 1 ng / ml'deki TGF-tedavisine eşdeğer iken, 500 μg / ml'lik dozajdaki BD, kondrojenik indüklemek için 5 ng / ml'deki TGF-tedavisine eşdeğerdi. farklılaşma (Şek.​(Şekil 6e,6e, f). Bu sonuçlar, BD'nin sulu özütü eklenirse TGF-y'nin kondral bazal ortamdan çıkarılabileceğini göstermektedir.

      BD'nin sulu ekstresinin parmak izini tanımlamak için yüksek performanslı sıvı kromatografi analizi gerçekleştirdik. BD saptamasının sulu özütünün temsili kromatogramı ve UV spektrumları Şekil 1'de sunulmuştur. 7. BD kökünün sulu özütünün kromatografik parmak izi analizi, bir ana pik gösterdi. Saflaştırılmış kimyasalı kullanarak, bu ana pikin klorojenik asit olduğunu belirledik (Şek.​(Şekil 7,7, giriş).


      Şekil 7
      BD'nin sulu ekstresinin kromatogramı ve UV spektrumu. Dulavratotu kökünün sulu özütü (10 mg / ml deiyonize su), C18 kolonuna sokuldu ve asetonitril ve% 0.1 asetik asit karışımı kullanılarak gradyan ile ayrıştırıldı. Temsili UV spektrumu gösterilmektedir. (giriş) Klorojenik asit (DMSO'da 1 mg / ml) eklendi ve temsili UV spektrumu gösterildi

      Tartışma
      İn vitro deneylerimiz, dulavratotu kökünün sulu özütünün, TGF-β varlığında hem 2D yüksek yoğunlukta hem de hMSC'lerin 3D mikro kütle kültürlerinde CIM kaynaklı kondrojenik farklılaşmayı arttırdığını gösterdi. Önceki çalışmalar, dulavratotu köklerini çıkarmak için farklı formüller uyguladı ve özler farklı amaçlar için kullanıldı. Örneğin, Tian ve ark. hidrojen peroksit (lH üzerine dulavratotu kökleri (EAL) arasında uygulanan Etil asetat özü, 2 O 2 insan SH-SY5Y nöroblastom hücrelerinde) -kaynaklı hücre hasarı. EAL'nin bir antioksidan görevi gördüğünü ve nöroprotektif bir etkiye sahip olduğunu buldular [ 50]. Yang vd. BD köklerinin etanol ekstraktının, özellikle aktif bileşiği oleamidinin, MAPK aracılı sinyal yoluyla histamin ve alerjik sitokinlerin salgılanmasını zayıflatarak anti-alerjik aktiviteye sahip olduğunu keşfetti [ 51 ]. Dulavratotu köklerinin sulu özütünün diğer uygulamaları arasında yüksek yağlı diyetin indüklediği vücut ağırlığı ve serum kolesterolünün zayıflatılması [ 52 ], sıçanlarda erkek cinsel davranışının iyileştirilmesi [ 53 ] ve lösemi hücrelerine anti-proliferatif ve pro-apoptotik etkiler bulunur [ 54 ]. Bu sonuçlar, farklı çözücüler içeren dulavratotu kökü ekstraktlarında çeşitli aktif bileşenlerin bulunabileceğini göstermektedir.

      Bu çalışmada, dulavratotu kökünün sulu ekstresi ile muamelenin hMSC'lere sitotoksik etkiye neden olmadığını gösterdik. Gerçekten de, 100 μg / ml dozajda serumsuz bir ortamda 7 günlük tedaviden sonra hücre proliferasyonunu arttırdı (Şek.​(Şekil 1b).1b). Ayrıca dulavratotu kökünün sulu özütünün CIM ile indüklenen kondrojenezi arttırdığını, ancak adipogenez ve osteogenezin güçlendirilmesi üzerinde çok az etkisi olduğunu veya hiç etkisi olmadığını keşfettik. SOX9, kondrojenez için gerekli bir transkripsiyon faktörüdür [ 18 ]. SOX9'un aktivasyonu, kollajen II [ 49 , 55 - 57 ], kıkırdak oligomerik matriks proteini [ 56 , 57 ] ve agrekan [ 58 gibi aşağı akış proteinlerini düzenler.]. Dulavratotu köklerinin sulu özütünün, SOX9'un protein seviyelerini ve nükleer lokalizasyonunu artırarak TGF-β bazlı CIM kaynaklı kondrojenik farklılaşmayı arttırdığını gösterdik. Ayrıca, kollajen II gibi SOX9 aşağı akış kondrojenik matris proteinlerinin artmış ekspresyonunu bulduk. Kondrojenik spesifik GAG'ler gibi kondrojenik spesifik proteoglikanların üretimi de artmıştır.

      TGF-β, hücre proliferasyonunun, apoptozun, bağışıklık sisteminin baskılanmasının ve gelişimin düzenlenmesinde rol alan pleiotropik bir sitokin olarak bilinir [ 59 - 61 ]. TGF-β ayrıca, aşağı akış etkisi olan SMAD'ın aktivasyonu yoluyla kondrojenik farklılaşma için gerekli bir sitokindir [ 62 - 64 ]. Önceki çalışmalar ve deneylerimiz, TGF-β içeren CIM'in 2B ve 3B kültür sistemlerinde hMSC'lerin kondrojenik farklılaşmasını başarıyla indüklediğini göstermiştir [ 6 , 19 , 47]. Dulavratotu kökü sulu özütünün CIM kaynaklı kondrojenik farklılaşmayı arttırdığını bulduk. Dulavratotu köklerinin sulu özütü, TGF-aşağı akış sinyallemesini güçlendirerek hareket edebilir. CIM ile indüklenen kondrojenezi güçlendirmek için dulavratotu kökünün sulu ekstraktındaki aktif bileşen (ler) in etkili dozajı, hem 2D hem de 3D mikro kütle kültürleri için 10 ug / ml'den daha yüksekti ve bu çok yüksek değildi. Dulavratotu ile, CIM'deki TGF-'nınkine eşdeğer bir kondrojenik indüksiyon kabiliyeti bulduk. Bununla birlikte, BD tedavisinin neden olduğu kondrojenik farklılaşmanın TGF-indüksiyonu yoluyla olup olmadığı açıklığa kavuşturulmalıdır. Önceki çalışmalar, TGF-β dışında, FGF'ler, BMP'ler ve IGF-1 gibi çeşitli büyüme faktörlerinin hem in vitro hem de in vivo kondrojenezi indüklediği bildirildi [ 9 - 12, 25 ]. Bu bulgular, yukarıdaki büyüme faktörlerinin BD'nin neden olduğu kondrojenik farklılaşmaya aracılık edebileceğini düşündürmektedir. Birlikte, dulavratotu kökünün bu sulu özütü, hücre proliferasyonunu hafifçe arttırdı, ancak kondrojenik farklılaşmayı artırmadı. Bu, BD varlığında kondrojenezi indüklemek için kondral bazal ortamda tamamlayıcı materyallere ihtiyaç olduğunu gösterir.

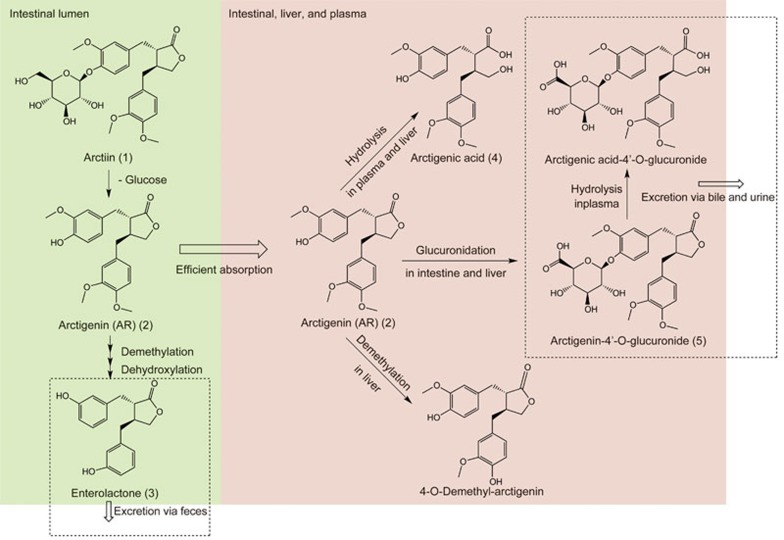
      Öte yandan, kromatogram ve UV spektrum çalışmamız, BD'nin sulu ekstraktındaki klorojenik asit olan önemli bir kimyasal gösterdi. Önceki bulgular, BD kök ekstresindeki arctiin ve arctigenin gibi birkaç ana bileşiği gösterdi [ 43 ]. Arctiin ve arctigenin, lignans ailesine aittir ve farklı hastalıkların tedavisi üzerinde çok sayıda etkiye sahip oldukları bulunmuştur [ 43 ]. Bu kimyasallar esas olarak organik çözücünün ekstraksiyonunda bulunur [ 29] yapısal yapıları nedeniyle. Bu nedenle, sulu BD özütümüzün bu kimyasalları içermeyeceğini tahmin ettik. İlginç bir şekilde, kromatogramımızdaki ana pikin klorojenik asit olduğu bulundu. Cheng ve arkadaşları, bir aljinat iskelede klorojenik asit uygulanmasının hasarlı eklem kıkırdağının onarımını iyileştirdiğini keşfetmişlerdir [ 65 ]. Bu çalışma, BD'nin neden olduğu kondrojenik farklılaşmaya klorojenik asit aracılık edebileceğini ima etmektedir. BD kaynaklı kondrojenik farklılaşmanın altında yatan ayrıntılı moleküler mekanizmalar açıklanmayı beklemektedir.

      Maghsoumi-Norouzabad vd. diz OA'nın tedavisi için dulavratotu kökü çayının kullanıldığını bildirdi. Hastalarına 42 gün boyunca günde 3 bardak dulavratotu kökü çayı (2 gr / 150 ml su) verdiler. Sonuç olarak, inflamatuar belirteçlerin miktarı azalırken, hem glutatyon peroksidaz hem de süperoksit dismutaz aktiviteleri gibi antioksidatif yetenek önemli ölçüde artmıştır [ 33 ]. Dulavratotu kökü sulu ekstresi dışında, Cai ve ark. dört geleneksel Çin otunun kemik iliğinden türetilen mezenkimal kök hücrelerin proliferasyonunu ve kondrojenezini desteklediğini bildirmişlerdir [ 66 ]. Dulavratotu kökü sulu ekstresinin kas-iskelet sistemi hastalıklarının tedavisi için alternatif bir strateji olarak kullanılabileceğini tahmin ediyoruz.

      Sonuç
      Birlikte ele alındığında bulgumuz, dulavratotu kökünün sulu özütünün CIM kaynaklı kondrojenik farklılaşmayı teşvik edebileceğini veya bu sulu dulavratotu kökü özütünün tek başına kondrojenik farklılaşmayı uyarmak için kullanılabileceğini göstermektedir. Yukarıdaki çalışma, dulavratotu kökünün sulu özütünün, tedavi amacıyla kondrojenezin indüksiyonunda alternatif bir strateji olarak kullanılabileceğini göstermektedir. Dulavratotu kökünün sulu ekstresindeki aktif bileşenleri tanımlamaya yönelik daha fazla çalışma açıklanacaktır.


      Ek dosya 1: Şekil S1. Şekil l'deki kırpılmamış Western blot sonuçları.​Şekil 33d. (430K, tif)


      Teşekkür
      Mükemmel teknik desteği için Bayan Yu-Chieh Wang'a ve parmak izi analizi için Dr. Yan-Lii Leu'ya (Chang-Gung Üniversitesi) teşekkür ederiz. Makaleyi düzenlediği için Ulusal Cheng Kung Üniversitesi, Yabancı Dil Merkezi'ndeki İngilizce Düzeltme Hizmetine teşekkür ederiz. Yazarlar ayrıca Ulusal Cheng Kung Üniversitesi Tıp Fakültesi Çekirdek Araştırma Laboratuvarı'nın desteğinden dolayı minnettar.

      Şuraya gidin: Kısaltmalar
      OA Kireçlenme
      CHM Çin bitkisel ilaçları
      TCM Geleneksel Çin Tıbbı
      hMSC (ler) İnsan mezenkimal kök hücre (ler) i
      DMEM DULBECCO'nun Modifiye Kartal Ortamı
      TGFβ: Dönüştürücü büyüme faktörü-β
      FGF Fibroblast büyüme faktörü
      BMP Kemik morfojenik proteini
      IGF-1 İnsülin benzeri büyüme faktörü-1
      SOX9 Sry-box transkripsiyon faktörü 9
      GAG (ler) Glikozaminoglikan (lar)
      BD Dulavratotu kökü sulu özü
      BM Bazal ortam
      Chon bazal TGFβ içermeyen kondrojenik indüksiyon ortamı
      CIM Kondrojenik indüksiyon ortamı
      OIM Osteojenik indüksiyon ortamı
      AMAÇ Adipojenik indüksiyon ortamı
      MTT 3- (4,5 Dimetiltiyazol-2-il) -2,5-Difeniltetrazolyum Bromür
      2D 2 boyutlu
      3 boyutlu 3 boyutlu
      EAL Dulavratotu köklerinin etil asetat özütü
      H 2 O 2 Hidrojen peroksit
      Şuraya gidin: Yazar katkıları


      KCW, HKW ve YKW, kavramsallaştırma ve deneysel tasarımdan, veri analizinden, verilerin yorumlanmasından ve yazının taslağından sorumluydu. Veri toplamadan KCW, HKW, YSH ve PJH sorumluydu. YKW, deneysel tasarım ve veri toplamayı denetledi ve çalışmayı koordine etti. Tüm yazarlar makalenin son taslağını okudu ve onayladı.

      Şuraya gidin: Finansman


      Bu çalışma, Bilim ve Teknoloji Bakanlığı (MoST 106–2320-B-006-042-MY3), Tayvan ROC'den YKW'ye, Ulusal Cheng Kung Üniversite Hastanesi'nden (NCKUH-10804037) Tayvan ROC'den HKW'ye ve Chang Gung Memorial Hastanesi'nden (CMRPG6H0601) Chia-Yi şubesinden KCW'ye. Deneysel tasarım, veri toplama, veri analizi ve veri yorumlama da bu fonları kullandı.

      Şuraya gidin: Veri ve materyallerin mevcudiyeti


      Mevcut çalışma sırasında kullanılan ve / veya analiz edilen veri kümeleri, makul talep üzerine ilgili yazardan temin edilebilir.

      Şuraya gidin: Etik onayı ve katılma onayı


      Uygulanamaz.

      Şuraya gidin: Yayın izni


      Uygulanamaz.

      Şuraya gidin: Çıkar çatışması


      Yazarlar, çıkar çatışması olmadığını beyan ediyorlar.

      Şuraya gidin: Dipnotlar


      Yayıncının Notu

      Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yargı yetkisine ilişkin iddialar konusunda tarafsız kalır.


      King-Chuen Wu ve Hung-Kai Weng bu çalışmaya eşit derecede katkıda bulundu.


      Şuraya gidin: Referanslar

      1. Felton DT, Lawrence RC, Dieppe PA, Hirsch R, Helmick CG, Jordan JM, et al. Osteoartrit: yeni bilgiler. Bölüm 1: hastalık ve risk faktörleri. Ann Intern Med. 2000; 133 : 635–646. doi: 10.7326 / 0003-4819-133-8-200010170-00016. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      2. Deshpande BR, Katz JN, Solomon DH, Yelin EH, Hunter DJ, Messier SP, ve diğerleri. ABD'de semptomatik diz osteoartriti olan kişilerin sayısı: ırk ve etnik köken, yaş, cinsiyet ve obezitenin etkisi. Artrit Bakımı Res. 2016; 68 : 1743–1750. doi: 10.1002 / acr.22897. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      3. Silverwood V, Blagojevic-Bucknall M, Jinks C, Jordan JL, Protheroe J, Jordan KP. Yaşlı yetişkinlerde diz osteoartriti için risk faktörlerine ilişkin güncel kanıtlar: sistematik bir inceleme ve meta-analiz. Osteoartr Kıkırdağı. 2015; 23 : 507–515. doi: 10.1016 / j.joca.2014.11.019. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      4. Essex MN, O'Connell MA, Behar R, Bao W. Diz osteoartriti olan Asyalı hastalarda nonsteroid antiinflamatuar ilaçların etkinliği ve güvenliği: randomize, plasebo kontrollü bir çalışmanın özeti. Int J Rheum Dis. 2016; 19 : 262–270. doi: 10.1111 / 1756-185X.12667. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      5. Chen FP, Chang CM, Hwang SJ, Chen YC, Chen FJ. Tayvan'daki osteoartrit için Çin bitkisel reçeteleri: Ulusal Sağlık Sigortası veri setinin analizi. BMC Complement Altern Med. 2014; 14 : 91. doi: 10.1186 / 1472-6882-14-91. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      6. Pittenger MF, Mackay AM, Beck SC, Jaiswal RK, Douglas R, Mosca JD, vd. Yetişkin insan mezenkimal kök hücrelerinin çok çizgili potansiyeli. Bilim. 1999; 284 : 143–147. doi: 10.1126 / science.284.5411.143. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      7. Volarevic V, Arsenijevic N, Lukic ML, Stojkovic M. Kısa inceleme: diabetes mellitus komplikasyonlarının mezenkimal kök hücre tedavisi. Kök hücreler. 2011; 29 : 5–10. doi: 10.1002 / stem.556. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      8. Ronzière MC, Perrier E, Mallein-Gerin F, Freyria AM. Kemik iliği ve yağ dokusu kaynaklı yetişkin insan mezenkimal kök hücrelerinin kondrojenik potansiyeli. Biomed Mater Müh. 2010; 20 : 145–158. [ PubMed ] [ Google Akademik ]
      9. Gonzalez-Fernandez T, Tierney EG, Cunniffe GM, O'Brian FJ, Kelly DJ. Eklem kıkırdağı ve Endokondral kemik dokusu mühendisliği için MSC yüklü bir aljinat hidrojelde TGF-β3 ve BMP2'nin gen iletimi. Tissue Eng Part B. 2016; 22 : 776–787. doi: 10.1089 / ten.tea.2015.0576. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      10. Handorf AM, Li WJ. Fibroblast büyüme faktörü-2, gelişmiş kondrojenez için insan mezenkimal kök hücrelerini hazırlar. PLoS One. 2011; 6 : e22887. doi: 10.1371 / journal.pone.0022887. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      11. Correa D, Somoza RA, Lin P, Greenberg S, Rom E, Duesler L, vd. Fibroblast büyüme faktörlerine (FGF) 2, 9 ve 18 sıralı maruz kalma, hMSC kondrojenik farklılaşmayı geliştirir. Osteoartr Kıkırdağı. 2015; 23 : 443–453. doi: 10.1016 / j.joca.2014.11.013. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      12. Estes BT, Wu AW, Guilak F. Kemik morfojenetik proteini ile insan adipozundan türetilmiş yetişkin kök hücrelerinin Kondrositik farklılaşmasının güçlü indüksiyonu 6. Artrit Romalı. 2006; 54 : 1222–1232. doi: 10.1002 / art.21779. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      13. Miljkovic ND, Cooper GM, Marra KG. Kondrojenez, kemik morfogenetik-4 ve mezenkimal kök hücreler. Osteoartr Kıkırdağı. 2008; 16 : 1121–1130. doi: 10.1016 / j.joca.2008.03.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      14. Munsell EV, Kurpad DS, Freeman TA, Sullivan MO. Kemik morfogenetik protein-2'nin histon hedefli gen transferi, mezenkimal kök hücre kondrojenik farklılaşmasını arttırır. Açta Biomater. 2018; 71 : 156–167. doi: 10.1016 / j.actbio.2018.02.021. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      15. Shi S, Wang C, Acton AJ, Eckert GJ, Trippel SB. Eklem kondrositlerinin büyüme faktörü düzenlenmesinde sox9'un rolü. J Cell Biochem. 2015; 116 : 1391–1400. doi: 10.1002 / jcb.25099. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      16. Frisch J, Rey-Rico A, Venkatesan JK, Schmitt G, Madry H, Cucchiarini M. rAAV aracılı gen transferi ve insülin benzeri büyüme faktörünün aşırı ekspresyonu üzerine insan kemik iliği aspiratlarında kondrojenik farklılaşma süreçleri I. Doku Eng Bölümü A. 2015; 21 : 2460–2471. doi: 10.1089 / ten.tea.2014.0679. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      17. Solchaga LA, Kitsie JP, Welter JF. Kemik iliğinden türetilen mezenkimal kök hücrelerin kondrojenik farklılaşması: ipuçları ve püf noktaları. Yöntemler Mol Biol. 2011; 698 : 253–278. doi: 10.1007 / 978-1-60761-999-4_20. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      18. Liu CF, Lefebvre V. SOX9 ve SOX5 / SOX6 transkripsiyon faktörleri, kondrojenezi yürütmek için süper güçlendiriciler aracılığıyla genom çapında işbirliği yapar. Nucleic Acids Res. 2015; 43 : 8183–8203. doi: 10.1093 / nar / gkv688. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      19. Chen YC, Wu KC, Huang BM, So EC, Wang YK. Midazolam, insan mezenkimal kök hücrelerinde periferik benzodiazepin reseptörü yoluyla kondrojenezi inhibe eder. J Cell Mol Med. 2018; 22 : 2896–2907. doi: 10.1111 / jcmm.13584. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      20. Sullivan DH, Carter WJ, Warr WR, Williams LH. Kırılgan yaşlı hastalara kombine tedavi olarak büyüme hormonu ve insülin benzeri büyüme faktörü-1 kullanımından kaynaklanan yan etki. J Gerontol A Biol Sci Med Sci. 1998; 53 : M183 – M187. doi: 10.1093 / gerona / 53A.3.M183. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      21. Blaney Davidson EN, van der Kraan PM, van den Berg WB. TGF-beta ve osteoartrit. Osteoartr Kıkırdağı. 2007; 15 : 597–604. doi: 10.1016 / j.joca.2007.02.005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      22. Mattison PC, Soler-Gacìa AA, Das JR, Jerebtsova M, Perazzo S, Tang P, vd. Farelerde lipopolisakkarit kaynaklı akut böbrek hasarında dolaşımdaki fibroblast büyüme faktörü-2'nin rolü. Pediatr Nephrol. 2012; 27 : 469–483. doi: 10.1007 / s00467-011-2001-z. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      23. James AW, LaChaud G, Shen J, Asatrian G, Nguyen V, Zhang X, vd. Kemik morfogenetik Protein-2'nin klinik yan etkilerinin gözden geçirilmesi. Tissue Eng Part B Rev. 2016; 22 : 284–297. doi: 10.1089 / ten.teb.2015.0357. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      24. Kyprianou N. TGF-β, androjen tükenmesinin istenmeyen yan etkilerini taşır. Endokrinoloji. 2016; 157 : 4206–4208. doi: 10.1210 / tr.2016-1728. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      25. Anderson LJ, Tamayose JM, Garcia JM. Anabolik amaç için büyüme hormonu, IGF-1 ve insülin kullanımı: farmakolojik temel, tespit yöntemi ve yan etkiler. Mol Cell Endocrinol. 2018; 464 : 65–74. doi: 10.1016 / j.mce.2017.06.010. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      26. Takeda H, Nakajima A, Kiriyama S. Diyet lifinin toksik bir amaramth dozundan muzdarip sıçanlarda üst gastrointestinal geçiş süresi üzerindeki yararlı etkisi. Biosci Biotechnol Biochem. 1992; 56 : 551–555. doi: 10.1271 / bbb.56.551. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      27. Carlotto J, da Silva LM, Dartora N, Maria-Ferreira D, Sabry Dde A, Filho AP, vd. Arctium lappa'dan güçlü bir anti-ülser aktivitesi olan bir dikaffeoilkinik asit izomerinin tanımlanması . Talanta. 2015; 135 : 50–57. doi: 10.1016 / j.talanta.2014.11.068. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      28. Horng CT, Wu HC, Chiang NN, Lee CF, Huang YS, Wang HY, vd. Dulavratotu yapraklarının elastaz ve tirozinaz aktivitesi üzerindeki inhibe edici etkisi. Exp Ther Med. 2017; 14 : 3247–3252. doi: 10.3892 / etm.2017.4880. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      29. Hayashi K, Narutaki K, Nagaoka Y, Hayashi T, Uesato S. İmmünokompetan ve influenza a virüsü ile enfekte olmuş farelerde arctiin ve arctigenin'in terapötik etkisi. Biol Pharm Bull. 2010; 33 : 1199–1205. doi: 10.1248 / bpb.33.1199. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      30. Lee YJ, Choi DH, Cho GH, Kim JS, Kang DG, Lee HS. Arctium lappa , yüksek yağ / kolesterol diyetleriyle beslenen sıçanlarda endotel disfonksiyonunu iyileştirir. BMC Complement Altern Med. 2012; 12 : 116. doi: 10.1186 / 1472-6882-12-116. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      31. Lin CC, Lu MJ, Yang JJ, Chung SC, Ujiie T. Arctium lappa'nın anti-enflamatuar ve radikal temizleme etkileri . Ben J Chin Med. 1996; 24 : 127–137. doi: 10.1142 / S0192415X96000177. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      32. Pomari E, Stefanon B, Colitti M. Bitki ekstraktlarının makrofajlarda H2O2 ile indüklenen enflamatuar gen ekspresyonu üzerindeki etkisi. J Inflamm Res. 2014; 7 : 103–112. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      33. Maghsoumi-Norouzabad L, Alipoor B, Abed R, Eftekhar Sadat B, Mesgari-Abbasi M, Asghari Jafarabadi M. Arctium lappa L. (dulavratotu) kök çayının diz osteoartritli hastalarda inflamatuar durum ve oksidatif stres üzerindeki etkileri . Int J Rheum Dis. 2016; 19 : 255–261. doi: 10.1111 / 1756-185X.12477. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      34. Kim YK, Koppula S, Shim DW, In EJ, Kwak SB, Kim MK, vd. Arctium lappa ekstresinin NLRP3 inflammasom aktivasyonu üzerindeki inhibe edici etkisi ve mekanizması . Kanıta Dayalı Tamamlayıcı Alternat Med. 2018; 2018 : 6346734. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      35. Ito Y, Maeda S, Sugiyama T. Sıçan kemik iliği hücrelerinde 7,12-dimetilbenz [a] antrasen kaynaklı kromozom sapmalarının sebze suları ile baskılanması. Mutat Res. 1986; 172 : 55–60. doi: 10.1016 / 0165-1218 (86) 90106-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      36. Di Giorgio C, Boyer L Meo MD, Laurant Cı Elias R Olliver E. in vitro ve DIG, bir bitkisel preparatın in vivo antimutajen etkileri Berberis Vulgaris , Taraxacum officinale ve Articum Lappa mitomisin C karşı, J Nat Med. 2015; 69 : 237–277. doi: 10.1007 / s11418-015-0886-8. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      37. Gürünanselage Don RA, Yap MK. Arctium lappa L. kök ekstresi, jurkat insan lösemik T hücrelerinde mitokondriyal aracılı kaspaz bağımlı apoptoz yoluyla hücre ölümünü indükler. Biomed Pharmacother. 2019; 110 : 918–929. doi: 10.1016 / j.biopha.2018.12.023. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      38. Liu W, Wang J, Zhang Z, Xu J, Xie Z, Slavin M, vd. Acticum Lappa, L'nin köklerinden bir fruktanın in vitro ve in vivo antioksidan aktivitesi . Int J Biol Marcomol. 2014; 65 : 446–453. doi: 10.1016 / j.ijbiomac.2014.01.062. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      39. Alhusaini A, Fadda L, Hasan IH, Ali HM, El Orabi NF, Badr AM, vd. Arctium lappa kökü özütü, oksidatif stresi ve inflamasyonu azaltarak ve Akt / GSK-3β sinyalini aktive ederek Kurşun kaynaklı karaciğer hasarını önler. Antioksidanlar (Basel) 2019; 8 : 582. doi: 10.3390 / antiox8120582. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      40. Chiang LC, Chiang W, Chang MY, Ng LT, Lin CC. Plantago majör ekstraktlarının ve ilgili bileşiklerin in vitro antiviral aktivitesi. Antivir Res. 2002; 55 : 53–62. doi: 10.1016 / S0166-3542 (02) 00007-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      41. Rajasekharan SK, Ramesh S, Satish AS, Lee J. Dulavratotu kökü ekstresi ve klebsiella pneumoniae'ye karşı klorojenik asidin antibiyofilm ve anti-β-laktamaz aktiviteleri . J Microbiol Biotechnol. 2017; 27 : 542–551. doi: 10.4014 / jmb.1609.09043. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      42. Yen CH, Chiu HF, Huang SY, Lu YY, Han YC, Shen YC, vd. Dulavratotu kompleksinin asemptomatik helicobacter pylori ile enfekte denekler üzerindeki yararlı etkisi: randomize, çift kör, plasebo kontrollü bir klinik çalışma. Helicobacter. 2018; 23 : e12469. doi: 10.1111 / hel.12469. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      43. Gao Q, Yang E, anti-enflamatuar etkileri, farmakokinetik özellikler ve arctigenin klinik etkinliklerinin Zuo Z. genel ve arctiin Arctium lappa L. Açta Pharm Sin. 2018; 39 : 787–801. doi: 10.1038 / aps.2018.32. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      44. Chan YS, Cheng LN, Wu JH, Chan E, Kwan YW, Lee SM, vd. Arctium lappa (dulavratotu) Inflammopharmacol'un farmakolojik etkilerinin gözden geçirilmesi. 2011; 19 : 245–254. doi: 10.1007 / s10787-010-0062-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      45. Guna G. Arctium lappa Linn'in terapötik değeri. -Bir inceleme. Asian J Pharmaceutical Clin Res. 2019; 12 : 539. [ Google Scholar ]
      46. McBeath R, Pirone DM, Nelson CM, Bhadriraju K, Chen CS. Hücre şekli, hücre iskeleti gerilimi ve RhoA, kök hücre soy bağlılığını düzenler. Dev Cell. 2004; 6 : 483–495. doi: 10.1016 / S1534-5807 (04) 00075-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      47. Gao L, McBeath R, Chen CS. Kök hücre şekli, Rac1 ve N-kadherin aracılığıyla kondrojenik ve miyojenik kaderi düzenler. Kök hücreler. 2010; 25 : 564–572. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      48. Woods A, Wang G, Beier F. RhoA / ROCK sinyallemesi, kondrojenez sırasında Sox9 ekspresyonunu ve aktin organizasyonunu düzenler. J Biol Chem. 2005; 280 : 11626–11634. doi: 10.1074 / jbc.M409158200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      49. Bell DM, Leung KKH, Wheatley SC, Ng LJ, Zhou S, Ling KW, vd. Sox9 doğrudan tip-II kollajen genini düzenler. Nat Genet. 1997; 16 : 174–178. doi: 10.1038 / ng0697-174. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      50. Tian X, Guo LP, Hu XL, Huang J, Fan YH, Ren TS, vd. Actium lappa L üzerinde koruyucu etkiler . hidrojen peroksit kaynaklı hücre hasarına karşı kökler ve SH-SY5Y hücrelerindeki potansiyel mekanizmalar. Cell Mol Neurobiol. 2015; 35 : 335–344. doi: 10.1007 / s10571-014-0129-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      51. Yang WS, Lee SR, Jeong YJ, Park DW, Cho YM, Joo HM, vd. Arctium lappa L' nin etanol ekstraktlarının antialerjik aktivitesi . kurutulmuş kökler ve aktif bileşiği Oleamide, RBL-2H3 hücrelerinde FcyRI aracılı ve mapk sinyallemesini düzenlemede. J Agric Food Chem. 2016; 64 : 3564–3573. doi: 10.1021 / acs.jafc.6b00425. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      52. Hou B, Wang W, Gao H, Cai S, Wang C. Arctium lappa L. köklerinin sulu ekstresinin serum lipid metabolizması üzerindeki etkileri . J Int Med Res. 2018; 46 : 158–167. doi: 10.1177 / 0300060517716341. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      53. Cao JF, Zhang PY, Xu CW, Huang TT, Bai YG, Chen KS. Arctium lappa L. (dulavratotu) köklerinin sulu ekstresinin erkek sıçanların cinsel davranışları üzerindeki etkisi. BMC Complement Altern Med. 2012; 12 : 8. doi: 10.1186 / 1472-6882-12-S1-P316. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      54. Matsumoto T, Hosono-Nishiyama K, Yamada H. Arctium lappa'dan butirolakton lignanların lösemik hücreler üzerindeki antiproliferatif ve apoptotik etkileri . Planta Med. 2006; 72 : 276–278. doi: 10.1055 / s-2005-916174. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      55. Ng LJ, Wheatley S, Muscat GE, Conway-Campbell J, Bowles J, Wright E, vd. SOX9, DNA'yı bağlar, transkripsiyonu aktive eder ve kondrojenez sırasında tip II kolajen ile birlikte ifade eder. Dev Biol. 1997; 183 : 108–121. doi: 10.1006 / dbio.1996.8487. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      56. Li H, Haudenschild DR, Posey KL, Hecht JT, Di Cesare PE, Yik JHN. Kollajen tip II ile karşılaştırmalı analiz, kıkırdak oligomerik matris proteinini birincil TGFy'ye yanıt veren bir gen olarak ayırt eder. Osteoartr Kıkırdağı. 2011; 19 : 1246–1253. doi: 10.1016 / j.joca.2011.07.011. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      57. Haleem-Smith H, Calderon R, Song Y, Tuan RS, Chen FH. Kıkırdak oligomerik matriks proteini, insan mezenkimal kök hücrelerinin kondrojenezi sırasında matris birleşimini artırır. J Cell Biochem. 2012; 113 : 1245–1252. doi: 10.1002 / jcb.23455. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      58. Sekiya I, Tsuji K, Koopman P, Watanabe H, Yamada Y, Shinomia K, vd. SOX9, agrekan gen promoter / güçlendirici aktivitesini arttırır ve kıkırdaktan türetilmiş bir hücre hattı olan TC6'da retinoik asit tarafından yukarı regüle edilir. J Biol Chem. 2000; 15 : 10738–10744. doi: 10.1074 / jbc.275.15.10738. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      59. Wu MY, Hill CS. Embriyonik gelişim ve homeostazda TGF-beta süper aile sinyali. Dev Cell. 2009; 16 : 329–343. doi: 10.1016 / j.devcel.2009.02.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      60. Yang L, Pang Y, Moses HL. TGF-beta ve bağışıklık hücreleri: tümör mikroçevresinde ve ilerlemesinde önemli bir düzenleyici eksen. Trends Immunol. 2010; 31 : 220–227. doi: 10.1016 / j.it.2010.04.002. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      61. Zhang Y, Alexander PB, Wang XF. Hücre proliferasyonunun ve hayatta kalmanın kontrolünde TGF-ailesi sinyali. Cold Spring Harb Perspect Biol. 2017; 9 : a022145. doi: 10.1101 / cshperspect.a022145. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      62. Coricor G, Serra R. TGF-β, p38 ve Smad bağımlı mekanizma yoluyla kondrositlerde SOX9 proteininin fosforilasyonunu ve stabilizasyonunu düzenler. Sci Rep. 2016; 6 : 38616. doi: 10.1038 / srep38616. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      63. Watanabe H, de Caestecker MP, Yamada Y. Smad, ERK1 / 2 ve p38 mitojen ile aktive edilmiş protein kinaz yolları arasındaki transkripsiyonel çapraz konuşma, kondrojenik ATDC5 hücrelerinde dönüştürücü büyüme faktörü-beta ile uyarılan agrekan gen ifadesini düzenler. J Biol Chem. 2001; 276 : 14466–14473. doi: 10.1074 / jbc.M005724200. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      64. Şarkı B, Estrada KD, Lyons KM. İskelet gelişimi ve rejenerasyonunda Smad sinyali. Sitokin Büyüme Faktörü Rev. 2009; 20 : 379–388. doi: 10.1016 / j.cytogfr.2009.10.010. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      65. Cheng X, Li K, Xu X, Li P, Yan Y, Wang G, vd. Aljinat kondrosit iskelesine klorojenik asit uygulamak, hasar görmüş eklem kıkırdağının onarımını iyileştirebilir. PLoS One. 2018; 13 : e0195326. doi: 10.1371 / journal.pone.0195326. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
      66. Cai B, Zhang A, Zhang X, Ge W, Dai G, Tan X, vd. Kemik iliğinden türetilen mezenkimal kök hücrelerin proliferasyonu ve kondrojenik farklılaşması üzerindeki etkilerin, dört "böbrek tonlayıcı" geleneksel Çin otu ile teşvik edilmesi. BioMed Res Intl. 2015; 2015 : 792161. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]

      Yorum yap


      • #4
        Arctium lappa Extract Suppresses Inflammation and Inhibits Melanoma Progression

        Bruno A. C. Nascimento,1 Luiz G. Gardinassi,2 Inaê M. G. Silveira,1 Marília G. Gallucci,1 Mariana A. Tomé,1 Júlia Fernanda D. Oliveira,1 Mirella R. A. Moreira,2 Alyne F. G. Meirelles,2 Lúcia H. Faccioli,2 Cristiane Tefé-Silva,1 and Karina F. Zoccal1,*
        Author information Article notes Copyright and License information Disclaimer
        This article has been cited by other articles in PMC.


        Abstract
        Background: Arctium lappa has been used as popular medicinal herb and health supplement in Chinese societies. Bioactive components from A. lappa have attracted the attention of researchers due to their promising therapeutic effects. In this study, we investigated the effects of A. lappa hydroalcoholic extract (Alhe) during different models of inflammation, in vivo. Methods: The anti-inflammatory activity was evaluated through the air pouch model. For this, mice received an inflammatory stimulus with lipopolysaccharide (LPS) and were later injected with Alhe. To assess anti-tumoral activity, the animals were inoculated with B16F10 cells and injected with Alhe every 5 days, along the course of 30 days. Controls were submitted to the same conditions and injected with the vehicle. Peritoneal or air pouch fluids were collected to evaluate leukocyte counting or cellular activation via quantification of cytokines and nitric oxide. Results: Alhe injection reduced the neutrophil influx and production of inflammatory mediators in inflammatory foci after LPS or tumor challenges. Furthermore, Alhe injection reduced tumor growth and enhanced mice survival. Conclusions: Collectively, these data suggest that Alhe regulates immune cell migration and activation, which correlates with favorable outcome in mouse models of acute inflammation and melanoma progression.

        Keywords: Arctium lappa, natural product, phytomedicine, inflammation, melanoma


        Introduction
        Inflammation is a complex process operating in response to noxious stimuli and tissue damage. Acute inflammation is characterized by tissue infiltration and accumulation of leukocytes, such as neutrophils and monocytes, and increasing vascular permeability that promotes protein extravasation and edema formation [1,2]. The observed alterations occur due to the production and release of pro-inflammatory (e.g., TNF-α, IL-1β, IL-6, prostaglandins) and anti-inflammatory (e.g., IL-10, TGF-β, leukotrienes) mediators [1]. However, excessive or unbalanced inflammation might lead to tissue damage and become counterproductive.

        Cancer is a major cause of death worldwide, while the inflammatory process is tightly connected to cancer progression [3]. Among several cancer types, skin cancer is characterized by an imbalance towards reduced apoptosis or increased cell proliferation and survival in the epidermis [4,5], combined with a failure of the immune system to contain the tumoral development. Although UV radiation is the leading cause of skin cancer, other causative agents include viruses, mutagens in food, mutagens in chemicals and genetic susceptibility [6,7]. Currently, skin cancer is treated by surgical removal, radiation therapy, chemotherapy, or cryosurgery [4]. Cancer chemo

        Arctium lappa Ekstresi, Enflamasyonu Bastırır ve Melanomun İlerlemesini Engeller

        Bruno AC Nascimento , 1 Luiz G. Gardinassi , 2 Inaê MG Silveira , 1 Marília G. Gallucci , 1 Mariana A. Tomé , 1 Júlia D. Oliveira , 1 Mirella RA Moreira , 2 Alyne FG Meirelles , 2 Lúcia H. Faccioli , 2 Cristiane Tefé-Silva , 1 ve Karina F.Zoccal 1, *
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
        Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır .
        Şuraya gidin:

        Öz
        Arka Plan: Arctium lappa, Çin toplumlarında popüler şifalı bitki ve sağlık takviyesi olarak kullanılmıştır. A. lappa'nın biyoaktif bileşenleri, umut verici terapötik etkileri nedeniyle araştırmacıların ilgisini çekmiştir. Bu çalışmada, A. lappa hidroalkolik ekstraktının (Alhe) farklı inflamasyon modelleri sırasında etkilerini in vivo araştırdık.

        Yöntemler:Anti-enflamatuar aktivite, hava kesesi modeli aracılığıyla değerlendirildi. Bunun için fareler, lipopolisakkarit (LPS) ile bir enflamatuar uyarı aldı ve daha sonra Alhe enjekte edildi. Anti-tümöral aktiviteyi değerlendirmek için hayvanlara B16F10 hücreleri aşılandı ve 30 gün boyunca 5 günde bir Alhe enjekte edildi. Kontroller aynı şartlara getirilerek araç enjekte edildi. Sitokinlerin ve nitrik oksidin nicelendirilmesi yoluyla lökosit sayımını veya hücresel aktivasyonu değerlendirmek için periton veya hava kesesi sıvıları toplandı.

        Sonuçlar: Alhe enjeksiyonu, LPS veya tümör yüklemelerinden sonra enflamatuar odaklarda nötrofil akışını ve enflamatuar aracıların üretimini azalttı. Ayrıca, Alhe enjeksiyonu, tümör büyümesini azalttı ve farelerin hayatta kalmasını artırdı.
        Sonuçlar: Toplu olarak, bu veriler, Alhe'nin, akut inflamasyon ve melanom ilerlemesinin fare modellerinde olumlu sonuçlarla ilişkili olan bağışıklık hücresi göçünü ve aktivasyonunu düzenlediğini göstermektedir.

        Anahtar Kelimeler: Arctium lappa , doğal ürün, fitomedikin , inflamasyon, melanom

        1. Giriş
        Enflamasyon, zararlı uyaranlara ve doku hasarına yanıt olarak işleyen karmaşık bir süreçtir. Akut inflamasyon, doku infiltrasyonu ve nötrofiller ve monositler gibi lökosit birikimi ve protein ekstravazasyonunu ve ödem oluşumunu teşvik eden artan vasküler geçirgenlikle karakterizedir [ 1 , 2 ]. Gözlenen değişiklikler, proinflamatuvar (örn., TNF-α, IL-1β, IL-6, prostaglandinler) ve antiinflamatuvar (örn., IL-10, TGF-β, lökotrienler) medyatörlerin üretimi ve salınmasına bağlı olarak meydana gelir [ 1 ]. Bununla birlikte, aşırı veya dengesiz iltihaplanma doku hasarına yol açabilir ve ters etki yapabilir.

        Kanser, dünya çapında önemli bir ölüm nedenidir ve enflamatuar süreç, kanserin ilerlemesiyle sıkı bir şekilde bağlantılıdır [ 3 ]. Çeşitli kanser türleri arasında, cilt kanseri, tümöral gelişimi kontrol altına almada bağışıklık sisteminin başarısızlığı ile birlikte , epidermiste azalmış apoptoz veya artmış hücre proliferasyonu ve hayatta kalma [ 4 , 5 ] yönünde bir dengesizlik ile karakterizedir . UV radyasyonu cilt kanserinin önde gelen nedeni olmasına rağmen, diğer etken maddeler arasında virüsler, gıdalardaki mutajenler, kimyasallarda mutajenler ve genetik duyarlılık bulunur [ 6 , 7 ]. Şu anda cilt kanseri cerrahi müdahale, radyasyon tedavisi, kemoterapi veya kriyocerrahi ile tedavi edilmektedir [ 4]. Kanser kemoterapisi, ciddi yan etkiler ve çoklu ilaç direnci oluşumu gibi birçok sorunla karşı karşıyadır [ 8 , 9 , 10 , 11 ]. Konvansiyonel kemoterapideki dezavantajlara paralel olarak, tamamlayıcı ve alternatif tıp üzerine araştırmalar kanser tedavisinde büyük bir yenilik potansiyeli sunmaktadır [ 12 , 13 ]. Bitki köklerinden, soğanlardan, kabuklardan, yapraklardan ve saplardan ekstrakte edilen fitokimyasal bileşikler, önemli anti-tümöral aktivite göstermiştir ve yenilikçi kemoterapi için umut verici adaylardır [ 4]. Şifalı bitkiler ve bunların doğal bileşenleri, çeşitli kökenlerden enflamatuar süreçleri tedavi etmek için uzun süredir dünya çapında halk tıbbında kullanılmaktadır. Özellikle Brezilya'da, endemik bitki türleri veya bunların özleri, geleneksel topluluklar tarafından aynı amaç için yaygın olarak kullanılmaktadır [ 14 , 15 , 16 ].

        Arctium lappa L. (halk arasında dulavratotu olarak bilinir), dünya çapında popüler tıpta bir diüretik ve antipiretik ajan olarak yaygın olarak kullanılmaktadır ve ayrıca HİPERTANSİYON, GUT, hepatit ve diğer inflamatuar bozuklukları tedavi etmek için de kullanılmıştır [ 17 , 18 ]. A. lappa özütlerine olan ilgi , geniş terapötik potansiyelleri nedeniyle artmıştır [ 19 , 20 , 21 ]. A. lappa özleri flavonoidler, lignanlar, tanenler, fenolik asitler, alkaloidler ve terpenoidler dahil olmak üzere çeşitli bileşikler içerir [ 20 ]. İlginç bir şekilde, A. lappa'daki lignanlar, lösemik hücreler üzerinde antiproliferatif ve apoptotik etkiler sergiler [ 22] ve ayrıca pankreas kanseri hücre dizileri üzerinde anti-tümöral etkilere sahiptir [ 23 ]. Ayrıca, A. lappa L., Arctigenin'in ana aktif bileşiğinin , MAPK ve NF-κB yolaklarının inhibisyonu yoluyla işleyen bir fare kolit modelinde anti-inflamatuar etki sergilediği gösterilmiştir [ 24 ].

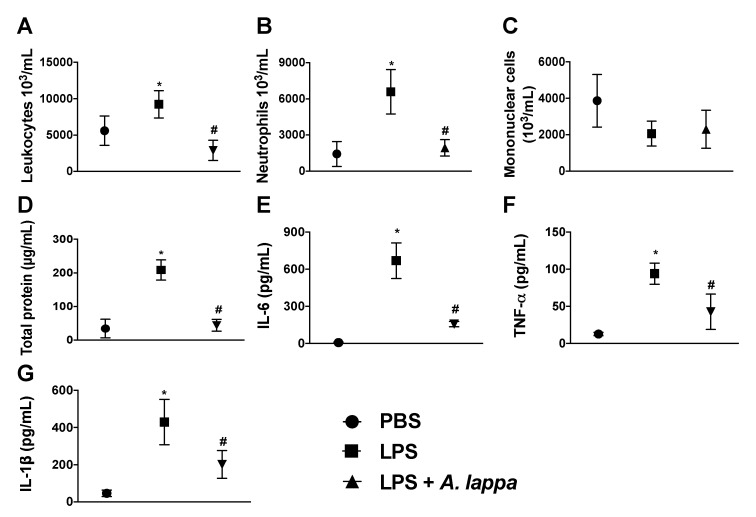
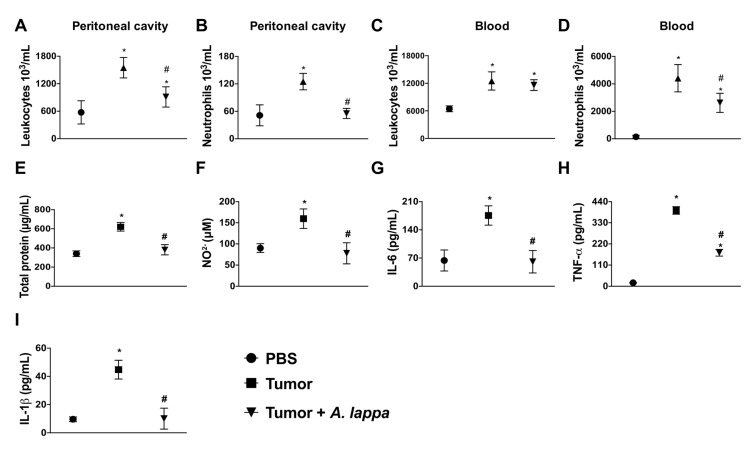
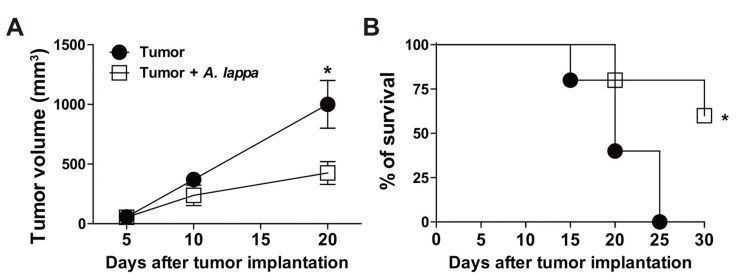
        Bu çalışmada, Alhe enjeksiyonunun in vivo farklı inflamasyon modelleri üzerindeki etkilerini araştırdık. Alhe ile tedavi edilen farelerde LPS veya tümöral hücre enjeksiyonundan sonra nötrofil infiltrasyonunda ve enflamatuar aracıların üretiminde önemli bir azalma gözlemledik. Ayrıca, Alhe enjeksiyonu melanom ilerlemesi ve fare ölümleri üzerinde çarpıcı bir etkiye sahipti.

        2. Malzemeler ve Yöntemler
        2.1. Hydroalchoolic Arctium lappa L. Ekstresi
        Arctium lappa özü100 gr öğütülmüş ve kuru ağaç kabuğundan elde edildi, 1 L% 70 etanol (JT Baker, Belo Horizonte, Brezilya) içinde çözüldü. Oda sıcaklığında koşullandırılmış koyu renkli bir şişe 72 saat boyunca günlük çalkalama ile kullanıldı ve ekstrakt daha sonra filtre kağıdı üzerinde süzüldü. Süzüntü, bir döner buharlaştırıcı (Eppendorf Vakum Konsantratörü Plus, Hamburg, Almanya) kullanılarak kurutuldu. Kurutulmuş ekstrakt tartıldı ve 997 uL PBS (fosfat tamponlu salin) ve 3 uL DMSO (Dimetil sülfoksit, Sigma-Aldrich, Saint Louis, MO, ABD) içinde 1 g / mL nihai konsantrasyon elde edilene kadar süspanse edildi. Bu ekstrakt süzüldü ve bir dondurucuda -20 ° C'de 500 μL'lik alikotlar halinde saklandı. Bitki örnekleri Brezilya'nın Minas Gerais eyaleti Uberaba şehrinde toplanmıştır (Lat. −19.743623, Long −47.828514). Örnekler analiz edildi ve Prof. Dr.

        2.2. Hayvanlar
        Erkek veya dişi Balb / c fareleri (6-8 haftalık), Centro Universitário Barão de Mauá'nın (São Paulo, Brezilya) hayvan tesisinde tutuldu. Fareler 25 ° C'de 12 saat / 12 saat aydınlık / karanlık döngüsü ile tutuldu ve yiyecek ve suya serbest erişim sağlandı. Tüm deneyler, Centro Universitário Barão de Mauá Araştırma ve Hayvan Deneyleri Etik Komitesi'nin yönergelerine uygun olarak onaylanmış ve yürütülmüştür (süreç no 280/17; 13 Nisan 2017).

        2.3. Kandaki ve Periton Boşluğundaki Alhe Dozu ve Lökosit Sayısının Belirlenmesi
        Farklı fare gruplarına (n = 5) , intraperitoneal yol (ip) yoluyla farklı konsantrasyonlarda (50, 300 ve 500 mg / kg) 300 uL Alhe enjekte edildi . Hayvanlar, kronik etki için toplam 30 günde bir özü aldı. Kontrol fare grubu, aynı özütün seyreltme oranında ip yoluyla 300 uL steril PBS + etanol aldı. Bunu takiben, hayvanlar bir CO ötenazi edildi 2odası ve kan hemen toplandı. Periton boşluğunun lavajı, periton içine 3 mL steril PBS enjekte edilerek gerçekleştirildi, bu 1 dakika boyunca nazikçe masaj yapıldı. Periton sıvısı, kasık bölgesine yerleştirilmiş bir iğneye sahip bir şırınga kullanılarak toplandı. Periferik kan hücreleri ve toplam peritoneal hücreler Neubauer odaları kullanılarak Turk solüsyonu ile sayıldı. Romanowsky boyama prosedürüne (Panótico_ Laborclin, Paraná, Brezilya) dayalı ticari bir kit ile boyanan sitospin preparatları üzerinde diferansiyel lökosit sayımları gerçekleştirildi. Deneyler iki kez yapıldı.

        2.4. Hava Kesesi İndüksiyonu ve Uyaran Enjeksiyonu
        Hava kesesini oluşturmadan önce, hayvanlara 100 uL ketamin (80 mg / kg) ve ksilazin (15 mg / kg) solüsyonu ile anestezi (ip) verildi. Farelerin sırt bölgesi tıraş edildi ve steril hava 3 mL steril bir filtre (Millex aracılığıyla, bir 25 G iğne ile deri altına enjekte edildi ® GV 0.22 mikron Merck Millipore, Ltd Tullagreen, RL). Üç gün sonra, daha önce tarif edildiği gibi önceden var olan hava kesesine 2 mL steril hava enjekte edildi [ 25]. 6. günde, ilk hava enjeksiyonundan sonra, hayvanlar hava kesesine 1 mL LPS (1 μg / mL) veya PBS aldı. 1 saat sonra 1 mL PBS veya Alhe (300 mg / kg / poşet) enjekte edildi. Steril PBS ile enjekte edilen hava keseleri, negatif kontroller olarak kullanıldı. 4 saat enjeksiyondan sonra, hayvanlara ötenazi uygulandı ve% 3.6 sodyum sitrat içeren 2 mL steril PBS, 1 dakika boyunca hafifçe masaj yapılan hava keselerine enjekte edildi. Lavaj sıvısı, hücreleri saymak ve enflamatuar aracıları ölçmek için toplandı. Deneyler iki kez yapıldı. 2.5. Anti-Tümoral Test


        Hayvanların (n = 5 / deney grubu) sırt bölgeleri trikotomize edildi. Ertesi gün, üssel bir büyüme fazı sergileyen kültürlenmiş B16F10 murin melanoma hücreleri, % 0.9 tuzlu su çözeltisi içinde 106 hücre / mL konsantrasyona ayarlandı . Tümoral hücreler, 106 hücre / 0.1 mL% 0.9 salin ile deri altından implante edildi . Tümör aşılamasından 4 saat sonra fareler, 30 gün boyunca her 5 günde bir PBS veya Alhe (vip ile 50 mg / kg) aldı. Fareler, tümör aşılamasından önce ve tümör yüklemesinden sonra her 5 günde bir tartıldı. Sağkalım da 30 gün boyunca izlendi. Kalan hayvanlara kan ve periton sıvısı toplamak için ötenazi yapıldı. Deneyler iki kez yapıldı.

        2.6. Nitrik Oksit (NO) ve Toplam Protein Miktarı
        Nitrit (NO 2 - ), Griess yöntemi ile NO üretiminin bir göstergesi olarak hücresiz sıvıda (periton veya hava kesesi boşlukları) ölçüldü [ 26 ]. Örneklerdeki nitrit miktarı, seri NaNO 2 seyreltileri kullanılarak standart bir eğri ile elde edildi . 540 nm'de absorbans NaNO ilavesinden sonra 10 dakika boyunca kaydedildi 2 . Toplam protein ekstravazasyonu, üreticinin talimatlarına göre Coomassie protein deneyi reaktifi (Pierce Chemical, Rockford, AZ, ABD) ile hücresiz sıvıda (periton veya hava keseleri boşlukları) ölçüldü.

        2.7. Sitokin Miktar Tayini
        Elde edilen hücresiz sıvı (periton veya hava keseleri boşlukları), üreticinin verilerine göre ticari ELISA kitleri (R&D Systems, Minneapolis, MN, ABD) ile IL-1β, TNF-α ve IL-6'yı ölçmek için kullanıldı. Talimatlar. Optik yoğunluklar, bir mikro-plaka okuyucuda 405 nm'de (μQuant ölçüldü ™ , Biotek ® Instruments, Inc. Winooski, VT, ABD).

        2.8. Tümör Değerlendirmesi
        Tümörler bir Vernier kumpas ile ölçüldü ve boyutları (mm 3 olarak ) daha önce tarif edildiği gibi hesaplandı [ 27 ]. Kısaca, tümör hacmi = (uzunluk × yükseklik × genişlik) / 2. Bu deney için fareler, tümör enjeksiyonundan sonra 30 gün boyunca izlendi.

        2.9. İstatistiksel Analizler
        İstatistiksel analizler GraphPad yazılımı v 5.0 (GraphPad, San Diego, CA, ABD) kullanılarak yapıldı. Veriler ortalama ± standart ortalama hatası (SEM) olarak ifade edildi. Herhangi iki grup arasındaki farklar, iki kuyruklu Student t- testi kullanılarak değerlendirildi . Birden fazla grubun karşılaştırılması için, tek yönlü varyans analizi (ANOVA) ve ardından Tukey'in post-hoc testi gerçekleştirdik. Hayatta kalma oranlarındaki farklılıklar, log-rank testi kullanılarak analiz edildi. Değerleri p <0.05 anlamlı kabul edildi.

        3. Sonuçlar
        3.1. Alhe'nin Lokal ve Periferik Lökosit Birikimi Üzerindeki Doza Bağlı Etkileri
        Alhe'nin fizyolojik durum sırasında etkilerini belirlemek için, Balb / c farelerine 30 gün boyunca her 5 günde bir ip yoluyla farklı Alhe dozları (50, 300 ve 500 mg / kg) enjekte edildi. Tek tek ağırlıklar enjeksiyondan önce karşılaştırılabilirken, herhangi bir dozda Alhe uygulaması zaman içinde kilo artışını etkilememiştir (veriler gösterilmemiştir). 300 ve 500 mg / kg dozlarında Alhe enjeksiyonu, periton boşluğuna önemli miktarda toplam lökosit ve nötrofil akışını indüklemiştir (Şekil 1Sırasıyla A, B). Ayrıca periferik kanda 300 ve 500 mg / Kg dozlarında lökositozda artış gözlemledik (Şekil 1C), ancak nötrofil sayıları yalnızca 500 mg / Kg dozunda artmıştır (Şekil 1D). Bu verilere dayanarak, farklı inflamasyon modellerinde biyolojik aktivitesini değerlendirmek için 300 mg / kg Alhe kullanıldı.


        Ayrı bir pencerede aç
        Şekil 1
        Alhe, periton boşluğuna ve periferik kana lökosit birikimine neden olur. Toplam lökositler ve nötrofiller, periton boşluğunda ( A , B ) veya periferik kanda ( C , D ) farklı konsantrasyonlarda (50, 300 ve 500 mg / kg) 300 μL Alhe enjeksiyonundan sonra değerlendirildi . Deney, grup başına beş fare (n = 10) kullanılarak iki kez gerçekleştirildi; hata çubukları ± SEM'i gösterir. * farklı dozlara karşı kontrol PBS'yi gösterir. Tukey son testi ile ANOVA'ya göre bu farklılıklar p <0,05 olduğunda anlamlı kabul edildi .

        3.2. Alhe, LPS Mücadelesine Yanıt Olarak Lökosit Yetiştirilmesini ve Aktivasyonunu Engelliyor
        Farklı A. lappa özleri ve izole edilmiş bileşikler, anti-enflamatuar özellikler sergilemesine rağmen , bu etkileri açıklayan mekanizmalar bilinmemektedir. İnflamatuar odaklara lökosit infiltrasyonunun etkilenip etkilenmediğini araştırmak için, LPS ile indüklenen inflamasyonun bir hava kesesi modeli kullandık. Kontrol hayvanlarına kıyasla, toplam lökosit sayıları, hava keselerine 4 saatlik LPS enjeksiyonundan sonra önemli ölçüde artmıştır (şekil 2A). Daha fazla hücre katmanlaşması, nötrofilin hava keselerinde biriken ana lökosit alt kümesi olduğunu gösterdi (şekil 2B). Mononükleer hücre sayıları kontrol grubuna benzerdi (şekil 2C). Alhe, hava keselerine toplam lökosit ve nötrofil akışını azaltırken, mononükleer hücre sayıları değişmeden kalmıştır (şekil 2AC).

        Ayrı bir pencerede aç
        şekil 2
        A. lappa özütü, lipopolisakkarit (LPS) ile iltihaplı hava keselerindeki iltihabı bastırır. Hava poşetlerine 1 saat fosfat tamponlu salin (PBS) (PBS / 1 mL / poşet) veya LPS (1 μg / mL / 1 mL / poşet) enjeksiyonundan sonra farelere Alhe (300 mg / kg / 1) enjekte edildi mL / poşet) veya PBS (PBS / 1 mL / poşet). Toplam ve diferansiyel lökosit sayıları 4 saat sonra lavaj sıvısında belirlendi. ( A ) Toplam lökositler, ( B ) nötrofiller, ( C ) mononükleer hücre sayıları ve ( D ) toplam protein miktarı. ( E ) IL-6, ( F ) TNF-α ve ( G) IL-1 p, ELISA ile ölçüldü. Deney, grup başına beş fare (n = 5) kullanılarak iki kez gerçekleştirildi ve hata çubukları, ortalama ± SEM'i gösterir. * LPS'ye karşı PBS (kontrol); # LPS ve LPS + A. lappa . Tukey son testi ile ANOVA'ya göre p <0.05 ise farklılıklar anlamlı kabul edildi .

        Alhe'nin yerel nötrofilik birikim üzerindeki önemli etkisi, LPS tehdidine karşı anti-enflamatuar aktivitesinin ilk kanıtını sağlar. Artmış vasküler geçirgenliğin bir sonucu olarak iltihaplı bölgelerde biriken yüksek toplam protein seviyeleri, ödem oluşumunu yansıtır. LPS tehdidi, toplam protein seviyelerinde önemli bir artışa neden olurken, Alhe ödem oluşumunu bastırdı (şekil 2D). Önemli olarak, Alhe, LPS ile uyarılan hayvanlarda IL-6, TNF-α ve IL-1β üretimini inhibe etti (şekil 2E – G, sırasıyla). Bu sitokinler, nötrofil alımı ve ödem oluşumu gibi farklı süreçlerde önemli roller oynar.

        3.3. Alhe Melanomun İlerlemesini ve Mortaliteyi Kısıtlıyor
        Enflamasyon, kanserin kritik bir özelliğidir ve yalnızca epitel hücrelerinin onkojenik dönüşümünü sağlamakla kalmaz, aynı zamanda büyümeyi, ilerlemeyi ve metastazı da teşvik eder. Bu nedenle, Alhe enjeksiyonunun etkilerini bir cilt kanseri modelinde belirlemeye çalıştık . Bu amaç için, Balb / c fareleri, deri altından 1 x 10 implante edildi 6 B16F10 hücrelerinin (melanom). Bu hayvanlara 30 gün boyunca Alhe (50 mg / kg) veya PBS enjekte edildi. Tümör implantasyonu, periton boşluğunda önemli miktarda toplam lökosit ve nötrofil birikmesine neden oldu ve bu, Alhe enjeksiyonu ile bastırıldı (Figür 3A, B). Ayrıca, Alhe enjeksiyonunun periferik kanda toplam lökosit birikimi üzerinde hiçbir etkisi olmamıştır (Figür 3C), ancak tümör implantasyonundan sonra dolaşımdaki nötrofillerin sayısını azalttı (Figür 3D). Ayrıca melanom implantasyonunun periton boşluğunda ödemi desteklediğini gözlemledik (Figür 3E) ve birkaç inflamatuar mediyatörün üretimini indükledi (Figür 3F – I). Unutulmamalıdır ki, Alhe enjeksiyonu ödem oluşumunu azaltmıştır (Figür 3E) ve NO salınımını bastırdı (Figür 3F), IL-6 (Figür 3G), TNF-α (Figür 3H) ve IL-1β (Figür 3I) periton boşluğunda. Bu sonuçlar birlikte, Alhe enjeksiyonunun enflamatuar süreçler üzerinde önemli etkiler gösterdiğini ve potansiyel bir anti-tümöral aktiviteyi düşündürdüğünü gösterdi. Bu hipotezi test etmek için, farelere deri altından 1 x 10 implante edildi 6 B16F10 hücrelerinin ve daha sonra enjekte ALHE 30 gün veya PBS. Çarpıcı bir şekilde, Alhe enjeksiyonu 20 gün sonra tümör büyümesini% 38 oranında bastırdı (Şekil 4A) ve 30 gün sonra (Şekil 4B).

        Ayrı bir pencerede aç
        Figür 3
        A. lappa özütü, tümör implantasyonu ile indüklenen inflamasyonu azalttı. ( A , C ) Toplam lökositler ve ( B , D ) nötrofil birikimi, B16F10 melanom implantasyonundan 30 gün sonra periton boşluğunda değerlendirildi. Hayvanlar 30 gün boyunca her 5 günde bir ip yoluyla Alhe (50 mg / kg / 300 uL) veya PBS (300 uL) aldı. ( E ) toplam protein, ( F ) HAYIR 2 - , ( G ), IL-6; ( H ) TNF-α ve ( I) IL-1 p, periton sıvısında ölçüldü. Deney, grup başına beş fare (n = 5) kullanılarak iki kez gerçekleştirildi. Veriler ortalama ± SEM'i temsil eder. * tümöre veya tümöre karşı kontrol + A. lappa ; # tümöre karşı A. lappa . Tukey son testi ile ANOVA'ya göre farklılıklar p <0.05 ile anlamlı kabul edildi .


        Ayrı bir pencerede aç
        Şekil 4
        A. lappa özütü, tümör büyümesini azaltır ve hayvan ölümlerini kurtarır. ( A ) Tümör boyutunun ve ( B ) farelerin hayatta kalmasının değerlendirilmesi için, B16F10 melanoma hücreleri implante edildi ve hayvanlara 30 gün boyunca her 5 günde bir Alhe (50 mg / kg / 300 uL) veya PBS (300 uL) verildi. ( A ) Tümörler bir Vernier kumpas ile ölçüldü ve tümör hacmi - tümör uzunluğu × yükseklik × genişlik / 2 denklemi ile hesaplandı. ( B ) Hayvan sağkalımı, 30 gün boyunca izlendi. Deney, grup başına beş fare (n = 5) kullanılarak iki kez gerçekleştirildi. Veriler ortalama ± SEM'i ifade eder. * Tümöre karşı tümör + A. lappa . Farklılıklar p ile anlamlı kabul edildi Tukey test sonrası (tümör büyümesi) veya log-sıra testi (farelerin hayatta kalması) ile ANOVA'ya göre <0.05.

        4. Tartışma
        Minimal yan etkilere sahip anti-enflamatuar ve anti-tümöral aktiviteye sahip yeni bileşiklerin araştırılması zordur. Önemli biyolojik aktiviteye sahip keşfedilmemiş birçok doğal kaynak, bu boşluğu doldurmak için araştırmaları teşvik etti. Bu çalışmada, A. lappa'nın farklı inflamasyon modalitelerinde güçlü antiinflamatuar özellikler sergilediğini doğruladık . En önemlisi, melanom ilerlemesine ve ölüm oranına karşı koruyucu etkinliği için in vivo olarak bir kavram kanıtı sağlıyoruz.. Bununla birlikte, etki mekanizmalarını anlamak için belirli bileşikleri ve ilgili biyolojik aktiviteleri tanımlamak için gelecekteki çalışmalar gereklidir. Hangi sınıf moleküllerin veya farklı bileşiklerin karışımının terapötik etkileri için gerekli olup olmadığını belirlemek önemli olacaktır. Ayrıca, burada gözlemlenen Alhe enjeksiyonunun etkilerinin, Alhe'nin ağızdan uygulanmasının etkileriyle ilişkili olup olmadığının detaylı bir değerlendirmesi de gereklidir. Bu özellikle önemlidir, çünkü intraperitoneal enjeksiyonlar hastaların tedavisi için uygun olmayacaktır, oysa ağızdan tedavi insanlarda A. lappa uygulaması için tercih edilen yol olacaktır .

        Akut bir enflamasyon modeli olan LPS-yüklemesinden sonra Alhe enjeksiyonunun önemli etkisi, nötrofil alımını, sitokin üretimini ve ödem oluşumunu düzenleyebilen hızlı bir etkiyi gösterir. Bu süreçler patojenlerin kontrolü ve ortadan kaldırılması için kritiktir, ancak düzensiz tepkiler doku hasarına neden olabilir ve hastalığı alevlendirebilir [ 28 , 29 ]. TNF-α, IL-6 ve IL-1β, hücre farklılaşması, proliferasyon, doku gelişimi ve ölümün yanı sıra doğuştan gelen ve adaptif immün yanıtları da içeren geniş bir biyolojik olay yelpazesini düzenleyen pleiotropik sitokinlerdir [ 30 , 31]. Her üç sitokin de iltihaplanma sırasında aşırı doku nötrofil birikimine katkıda bulunur. Romatoid artrit sırasında nötrofiller, TNF-α ve IL-6'ya yanıt olarak sinoviyal dokuyu biriktirir ve yok eder [ 32 , 33 , 34 ]. Dahası, akrep zehirlenmesinden sonra akciğerlerde nötrofil birikimi, ödem oluşumu ve ölüm için IL-1β'nın gerekli olduğunu gösterdik [ 35 , 36 ]. Burada bildirilen veriler, A. lappa ekstresinin artrit, akciğer iltihabı, kardiyovasküler hastalıklar, astım ve kanser gibi çeşitli enflamatuar hastalıklar sırasında yararlı etkisini gösteren diğer bulguları da desteklemektedir [ 19 , 37 , 38].

        A. lappa özütünün hücre yaşayabilirliğini azalttığı, apoptoza neden olduğu ve ayrıca meme kanseri hücre dizileri MCF7 ve MDA-MB-231'in proliferasyonunu azalttığı gösterilmiştir [ 39 ]. Başka bir çalışma, A. lappa ekstresinin K562 (lösemi) ve 786-0 (böbrek kanseri) gibi ek hücre dizilerine karşı anti-proliferatif aktivitesini bulmuştur [ 40 ]. Ayrıca A. lappa kökü ekstresi, toksik maddelere karşı koruyucu özellikler gösterir, hücre mutasyonlarını azaltır. A. lappa anti-tümöral aktivitesi ile ilgili çoğu çalışma , anti-tümöral tedaviler için hedeflenen hücre içi yolları etkileyen lignanlar olan Arctigenin ve Arctiin ile yapılmıştır. Arctigenin besinden yoksun kanser hücrelerini ortadan kaldırabilir [ 22], karaciğer kanseri tümör oluşumunu inhibe etmek [ 41 ] ve B16BL6 melanom hücrelerinde melanin sentezini bastırmak için [ 42 ]. Arctiin, siklin D1 ekspresyonunun durmasıyla ilişkili olan insan prostat kanseri PC-3 hücrelerinin büyümesini inhibe eder [ 43 ]. Bununla birlikte, bu çalışmaların çoğu in vitro olarak yapılmıştır. Verilerimiz, A. lappa özütünün deneysel melanom sırasında önemli anti-tümöral aktiviteye sahip olduğunu göstererek bu bilgiyi genişletir . Tümörlerden kaynaklanan çok sayıda faktör, sitokinler gibi inflamatuar aracıların üretimini uyarır [ 30 , 44], ama aynı zamanda hematopoezi nötrofil çıktısında bir genişlemeye doğru yeniden programladı. Aktive nötrofiller tümör hücrelerini öldürür, ancak son kanıtlar nötrofil aktivasyonunun stromal yeniden şekillenme, T hücresine bağlı anti-tümör bağışıklığının bozulması veya hatta anjiyogenezi uyararak tümör ilerlemesini ve metastazı tetikleyebileceğini göstermektedir [ 45 ]. Çalışmamız, tümör hücreleri üzerindeki doğrudan etkisinin yanı sıra, A. lappa özütünün LPS veya melanomun neden olduğu iltihaplanma sırasında nötrofil göçünü baskıladığını göstermektedir. Bu azalma, inflamatuar sitokinler IL-6, TNF-a ve IL-1β'nin daha düşük seviyeleri, azalmış ödem oluşumu ve azalmış NO üretimi ile ilişkilidir. Bu nedenle Alhe, melanom ilerlemesine karşı direnci artırabilir ve enflamasyonu düzenleyerek farelerin hayatta kalmasını artırabilir.

        Teşekkür
        A. lappa'nın analizi ve tanımlanması için Milton Groppo'ya (Universidade de São Paulo) minnettarız ; ve A. lappa ekstresi sağlamak için Mirella S. Reis .

        Yazar Katkıları
        Kavramsallaştırma ve tasarım, LGG ve KFZ; BACN, IMGS, MGG, MAT, JFDO, MRAM, AFGM, CT-S deneylerini gerçekleştirdi. ve KFZ; Resmi analiz, tüm yazarlar; Veri yorumlama, LGG, LHF, CT-S. ve KFZ, Yazma - orijinal taslak hazırlama, LGG ve KFZ; Makalenin kritik revizyonu: tüm yazarlar.

        Finansman
        Bu araştırma Centro Universitário Barão de Mauá tarafından finanse edildi.

        Çıkar çatışmaları
        Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

        Referanslar
        1. Chen CJ, Kono H., Golenbock D., Reed G., Akira S., Rock KL Ölmekte olan hücreler tarafından tetiklenen steril enflamatuar yanıt için gerekli bir anahtar yolun tanımlanması. Nat. Med. 2007; 13 : 851–856. doi: 10.1038 / nm1603. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Rock KL, Latz E., Ontiveros F., Kono H. Steril inflamatuar yanıt. Annu. Rev. Immunol. 2010; 28 : 321–342. doi: 10.1146 / annurev-immunol-030409-101311. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        3. Mantovani A., Allavena P., Sica A., Balkwill F. Kansere bağlı enflamasyon. Doğa. 2008; 454 : 436–444. doi: 10.1038 / nature07205. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Chinembiri TN, du Plessis LH, Gerber M., Hamman JH, du Plessis J. Potansiyel cilt kanseri tedavisi için doğal bileşiklerin gözden geçirilmesi. Moleküller. 2014; 19 : 11679–11721. doi: 10.3390 / molecules190811679. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        5. Lippens S., Hoste E., Vandenabeele P., Agostinis P., Declercq W. Deride hücre ölümü. Apoptoz. 2009; 14 : 549–569. doi: 10.1007 / s10495-009-0324-z. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        6. Freedman ND, Park Y., Subar AF, Hollenbeck AR, Leitzmann MF, Schatzkin A., Abnet CC Büyük bir prospektif kohort çalışmasında meyve ve sebze alımı ve özofagus kanseri. Int. J. Cancer. 2007; 121 : 2753–2760. doi: 10.1002 / ijc.22993. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        7. Wilson ML, Elston DM, Tyler WB, Marks VJ, Ferringer T. Kronik lenfositik lösemili hastalarda melanom dışı cilt kanseri ile ilişkili yoğun lenfositik sızıntılar. Dermatol. Çevrimiçi J. 2010; 16 : 4. [ PubMed ] [ Google Akademik ]
        8. Alifrangis C., Koizia L., Rozario A., Rodney S., Harrington M., Somerville C., Peplow T., Waxman J. Kanser hastalarının deneyimleri. QJM. 2011; 104 : 1075–1081. doi: 10.1093 / qjmed / hcr129. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Thornton M., Parry M., Gill P., Mead D., Macbeth F. Zor seçimler: İleri akciğer kanseri hastaları tarafından verilen tedavi kararları üzerindeki etkilerin niteliksel bir çalışması. Int. J. Palliat. Nurs. 2011; 17 : 68–74. doi: 10.12968 / ijpn.2011.17.2.68. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        10. Sun G., Zhao L., Zhong R., Peng Y. Kanser kemoterapisinde O (6) -metilguanin-DNA metiltransferaz inhibitörlerinin spesifik rolü. Future Med. Chem. 2018; 10 : 1971–1996. doi: 10.4155 / fmc-2018-0069. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        11. Sun G., Fan T., Zhao L., Zhou Y., Zhong R. Antikanser ajanlar olarak DNA'ya zarar verme işlevi olan kombi moleküllerin potansiyeli. Future Med. Chem. 2017; 9 : 403–435. doi: 10.4155 / fmc-2016-0229. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        12. Molassiotis A., Fernández-Ortega P., Pud D., Özden G., Scott JA, Panteli V., Margulies A., Browall M., Magri M., Selvekerova S., vd. Kanser hastalarında tamamlayıcı ve alternatif tıbbın kullanımı: Bir Avrupa araştırması. Ann. Oncol. 2005; 16 : 655–663. doi: 10.1093 / annonc / mdi110. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        13. Fan T., Sun G., Sun X., Zhao L., Zhong R., Peng Y. Tümör Enerji Metabolizması ve Aerobik Glikolizin İnhibitörü Olarak 3-Bromopiruvatın Potansiyeli: Tümör Tedavisindeki Etkiler. Kanserler. 2019; 11 : 317. doi: 10.3390 / cancers11030317. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        14. De Souza GC, Haas AP, von Poser GL, Schapoval EE, Elisabetsky E. Brezilya'nın güneyinde antimikrobiyal ilaçların etnofarmakolojik çalışmaları. J. Ethnopharmacol. 2004; 90 : 135–143. doi: 10.1016 / j.jep.2003.09.039. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        15. Holetz FB, Pessini GL, Sanches NR, Cortez DA, Nakamura CV, Filho BP Brezilya halk tıbbında bulaşıcı hastalıkların tedavisinde kullanılan bazı bitkilerin taranması. Memórias Inst. Oswaldo Cruz. 2002; 97 : 1027–1031. doi: 10.1590 / S0074-02762002000700017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        16. De Melo JG, Santos AG, de Amorim EL, do Nascimento SC, de Albuquerque UP Brezilya'da antitümör ajanları olarak kullanılan şifalı bitkiler: Etnobotanik bir yaklaşım. Kanıt. Tabanlı Tamamlayıcı. Alternatif. Med. 2011; 2011 : 365359. doi: 10.1155 / 2011/365359. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        17. Pereira JV, Bergamo DC, Pereira JO, França Sde C., Pietro RC, Silva-Sousa YT Arctium lappa bileşenlerinin endodontik enfeksiyonlarda yaygın olarak bulunan mikroorganizmalara karşı antimikrobiyal aktivitesi. Braz. Dent. J. 2005; 16 : 192–196. doi: 10.1590 / S0103-64402005000300004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        18. Predes Fde S., Diamante MA, Foglio MA, Dolder H. Arctium lappa'nın Yetişkin Wistar Sıçanlarının Testis ve Epididiminde Kadmiyum Kaynaklı Hasar Üzerindeki Etkileri. Biol. Elem'i izle. Res. 2016; 173 : 362–371. doi: 10.1007 / s12011-016-0663-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        19. Chan YS, Cheng LN, Wu JH, Chan E., Kwan YW, Lee SM, Leung GP, Yu PH, Chan SW Arctium lappa (dulavratotu) Inflammopharmacology'nin farmakolojik etkilerinin bir incelemesi. 2011; 19 : 245–254. doi: 10.1007 / s10787-010-0062-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. Ferracane R., Graziani G., Gallo M., Fogliano V., Ritieni A. Dulavratotu (Arctium lappa) tohumları, kökleri ve yapraklarının biyoaktif bileşiklerinin metabolik profili. J. Pharm. Biomed. Anal. 2010; 51 : 399–404. doi: 10.1016 / j.jpba.2009.03.018. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        21. Lin SC, Lin CH, Lin CC, Lin YH, Chen CF, Chen IC, Wang LY Arctium lappa Linne'nin kronik etanol tüketimiyle indüklenen ve karbon tetraklorür ile güçlendirilen karaciğer yaralanmaları üzerindeki hepatoprotektif etkileri. J. Biomed. Sci. 2002; 9 : 401–409. doi: 10.1159 / 000064549. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        22. Awale S., Lu J., Kalauni SK, Kurashima Y., Tezuka Y., Kadota S., Esumi H. Kanser hücrelerinin besin açlığına karşı toleransını ortadan kaldırma yeteneğine sahip bir antitümör ajan olarak arctigenin tanımlanması. Cancer Res. 2006; 66 : 1751–1757. doi: 10.1158 / 0008-5472.CAN-05-3143. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        23. Matsumoto T., Hosono-Nishiyama K., Yamada H. Arctium lappa'dan butirolakton lignanların lösemik hücreler üzerindeki çoğalmayı önleyici ve apoptotik etkileri. Planta Med. 2006; 72 : 276–278. doi: 10.1055 / s-2005-916174. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        24. Wu X., Yang Y., Dou Y., Ye J., Bian D., Wei Z., Tong B., Kong L., Xia Y., Dai Y. Farelerde dekstran sülfat sodyumun neden olduğu kolonik enflamatuar tepkiyi hafifletmek için Arctium lappa L. meyvesinin bileşeni. Int. Immunopharmacol. 2014; 23 : 505–515. doi: 10.1016 / j.intimp.2014.09.026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        25. Fronza M., Muhr C., da Silveira DS, Sorgi CA, Rodrigues SF, Farsky SH, Paula-Silva FW, Merfort I., Faccioli LH Hiyalüronidaz, enflamatuar bölgeye nötrofil infiltrasyonunu azaltır. Inflamm. Res. 2016; 65 : 533–542. doi: 10.1007 / s00011-016-0935-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        26. Green LC, Ruiz de Luzuriaga K., Wagner DA, Rand W., Istfan N., Young VR, Tannenbaum SR Nitrat biyosentezi insanda. Proc. Natl. Acad. Sci. AMERİKA BİRLEŞİK DEVLETLERİ. 1981; 78 : 7764–7768. doi: 10.1073 / pnas.78.12.7764. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        27. Looney WB, Mayo AA, Janners MY, Mellon JG, Allen P., Salak D., Morris HP Cell proliferation ve hepatomas 3924A'da tümör büyümesi. Cancer Res. 1971; 31 : 821–825. [ PubMed ] [ Google Akademik ]
        28. Kolaczkowska E., Kubes P. Nötrofil alımı ve sağlık ve enflamasyonda işlevi. Nat. Rev. Immunol. 2013; 13 : 159–175. doi: 10.1038 / nri3399. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        29. Wright HL, Moots RJ, Bucknall RC, Edwards SW Enflamasyon ve enflamatuar hastalıklarda nötrofil işlevi. Romatoloji. 2010; 49 : 1618–1631. doi: 10.1093 / romatoloji / keq045. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        30. Qu X., Tang Y., Hua S. Kanser ve Enflamasyona Karşı İmmünolojik Yaklaşımlar: Bir Çapraz Konuşma. Ön. Immunol. 2018; 9 : 563. doi: 10.3389 / fimmu.2018.00563. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        31. Zhang H., Yan D., Shi X., Liang H., Pang Y., Qin N., Chen H., Wang J., Yin B., Jiang X., et al. Transmembran TNF-alfa Raji Burkitt lenfoma hücrelerinde NF-kappaB yolu aracılığıyla hücre ölümünü veya hayatta kalmayı indükleyerek "ileri" ve "geri" sinyallemeye aracılık eder. J. Leukoc. Biol. 2008; 84 : 789–797. doi: 10.1189 / jlb.0208078. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        32. Hwang SY, Kim JY, Kim KW, Park MK, Moon Y., Kim WU, Kim HY IL-17, NF-kappaB- ve PI3-kinaz yoluyla romatoid artrit sinovyal fibroblastlarda IL-6 ve IL-8 üretimini indükler. / Akt'ye bağlı yollar. Arthritis Res. Ther. 2004; 6 : 120–128. doi: 10.1186 / ar1038. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        33. Tudan C., Jackson JK, Blanis L., Pelech SL, Burt HM Kalsiyum pirofosfat dihidrat kristalleri tarafından TNF-alfa ile indüklenen nötrofil apoptozunun inhibisyonu, hücre dışı sinyalle düzenlenen kinaz ve fosfatidilinozitol 3-kinaz / Akt yolakları aracılığıyla gerçekleşir. kaspazın yukarı akışı 3. J. Immunol. 2000; 165 : 5798–5806. doi: 10.4049 / jimmunol.165.10.5798. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        34. Verri WA, Jr., Souto FO, Vieira SM, Almeida SC, Fukada SY, Xu D., Alves-Filho JC, Cunha TM, Guerrero AT, Mattos-Guimaraes RB, vd. IL-33, romatoid artritte nötrofil göçünü indükler ve anti-TNF terapisinin bir hedefidir. Ann. Rheum. Dis. 2010; 69 : 1697–1703. doi: 10.1136 / ard.2009.122655. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        35. Zoccal KF, Gardinassi LG, Sorgi CA, Meirelles AFG, Bordon KCF, Glezer I., Cupo P., Matsuno AK, Bollela VR, Arantes EC, vd. CD36, CD14 Lisanslı İnterlökin-1beta Salımını ve Enflamasyonu Bastırmak için Eikosanoid Metabolizmasını Şantlar. Ön. Immunol. 2018; 9 : 890. doi: 10.3389 / fimmu.2018.00890. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        36. Zoccal KF, Sorgi CA, Hori JI, Paula-Silva FW, Arantes EC, Serezani CH, Zamboni DS, Faccioli LH Enflammasoma bağlı akrep zehiri kaynaklı mortalitenin düzenlenmesinde LTB4 ve PGE2'nin karşıt rolleri. Nat. Commun. 2016; 7 : 10760. doi: 10.1038 / ncomms10760. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        37. Gao Q., Yang M., Zuo Z. Arctium lappa L.'den arctigenin ve arctiin'in anti-enflamatuar etkileri, farmakokinetik özellikleri ve klinik sonuçlarına genel bakış. Açta Pharmacol. Günah. 2018; 39 : 787–801. doi: 10.1038 / aps.2018.32. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        38. He Y., Fan Q., Cai T., Huang W., Xie X., Wen Y., Shi Z. Arctigenin'in kanserdeki etkisinin moleküler mekanizmaları. Biomed. Pharmacother. 2018; 108 : 403–407. doi: 10.1016 / j.biopha.2018.08.158. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        39. Ghafari F., Rajabi MR, Mazoochi T., Taghizadeh M., Nikzad H., Atlasi MA, Taherian A. Arctium Lappa Kök Ekstresi ve Doksorubisinin MCF7 ve MDA-MB-231 Hücre Hatları üzerindeki Apoptoz ve Nekroz Etkilerinin Karşılaştırılması. Asya Pac. J. Cancer Prev. 2017; 18 : 795–802. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        40. Predes FS, Ruiz AL, Carvalho JE, Foglio MA, Dolder H. Arctium lappa kökü ekstrelerinin antioksidatif ve in vitro antiproliferatif aktivitesi. BMC Tamamlayıcı. Alternatif. Med. 2011; 11 : 25. doi: 10.1186 / 1472-6882-11-25. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        41. Sun Y., Tan YJ, Lu ZZ, Li BB, Sun CH, Li T., Zhao LL, Liu Z., Zhang GM, Yao JC, vd. Arctigenin, C / EBPalpha ve PPARalpha yoluyla Gankyrin Ekspresyonunu İnhibe ederek Karaciğer Kanseri Tümörijenezini inhibe eder. Ön. Pharmacol. 2018; 9 : 268. doi: 10.3389 / fphar.2018.00268. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        42. Park H., Song KH, Jung PM, Kim JE, Ro H., Kim MY, Ma JY Fructus Arctii Ekstraktından Arctigenin'in Tirozinaz İfadesinin Bastırılmasıyla Melanin Sentezi Üzerindeki Önleyici Etkisi. Kanıt. Tabanlı Tamamlayıcı. Alternatif. Med. 2013; 2013 : 965312. doi: 10.1155 / 2013/965312. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        43. Matsuzaki Y., Koyama M., Hitomi T., Yokota T., Kawanaka M., Nishikawa A., Germain D., Sakai T. Bir rctiin, siklin D1 ekspresyonunun aşağı regülasyonu yoluyla hücre büyümesi inhibisyonunu indükler. Oncol. Rep. 2008; 19 : 721–727. doi: 10.3892 / veya.19.3.721. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        44. Bradley JR TNF aracılı enflamatuar hastalık. J. Pathol. 2008; 214 : 149–160. doi: 10.1002 / yol.2287. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        45. Singel KL, Segal BH Tümör mikroçevresinde nötrofiller: İyileşemeyen yarayı iyileştirmeye çalışmak. Immunol. Rev. 2016; 273 : 329–343. doi: 10.1111 / imr.12459. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

        Yorum yap


        • #5
          Arctium lappa L' den arctigenin ve arctiin'in anti-enflamatuar etkilerine, farmakokinetik özelliklerine ve klinik etkililiğine genel bakış

          Qiong Gao , 1 Mengbi Yang , 1 ve Zhong Zuo 1, *
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
          Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır .
          Şuraya gidin:

          Öz
          Arctigenin (AR) ve glikozidi, arctiin, Asya'da sıklıkla kullanılan popüler bir şifalı bitki ve sağlık takviyesi olan Arctium lappa L'nin ( A lappa) iki ana aktif bileşenidir . Son birkaç on yılda, A lappa'daki biyoaktif bileşenler , umut verici terapötik etkileri nedeniyle araştırmacıların dikkatini çekti. Bu makalede, AR ve arktiin farmakolojisine, antiinflamatuvar etkilerine, farmakokinetik özelliklerine ve klinik etkililiklerine odaklanarak genel bir bakış sunmayı amaçladık. Akritin ile karşılaştırıldığında AR, A lappa'nın en güçlü biyoaktif bileşeni olarak rapor edilmiştir.çalışmaların çoğunda. AR, birkaç sitokinin modülasyonu yoluyla indüklenebilir nitrik oksit sentazı (iNOS) inhibe ederek güçlü anti-enflamatuar aktiviteler sergiler. Güçlü anti-enflamatuar etkilerinden dolayı AR, hem akut enflamasyona hem de çeşitli kronik hastalıklara karşı potansiyel bir terapötik bileşik olarak hizmet edebilir. Bununla birlikte, farmakokinetik çalışmalar, AR'nin karaciğer, bağırsak ve plazmada yaygın glukuronidasyonunu ve hidrolizini göstermiştir; bu , oral uygulamadan sonra in vivo ve klinik etkinliğini engelleyebilir . AR'nin gözden geçirilmiş farmakolojik ve farmakokinetik özelliklerine dayalı olarak, alternatif uygulama yolları yoluyla AR'nin daha ileri farmakokinetik ve farmakodinamik çalışmaları, AR'nin terapötik bir ajan olarak hizmet etme kabiliyetini ve ayrıcaBir lappa .

          Anahtar kelimeler: arctigenin, arctiin, Arctium lappa L, Fructus Arctii, antiinflamatuvar ajanlar, farmakokinetik, klinik etkinlik
          Şuraya gidin: Giriş
          Arctigenin (AR) (Şekil 1), Fenılpropanoıd dizbenzylbutyrolactone lignan, ilk tespit edildi Arctium lappa L ( A lappa ), sıkça Asya'da karşıtı grip tedavisi, özellikle Çin, Kore ve Japonya'da kullanılan popüler bir şifalı ot ve sağlık takviyesi. AR ve onun glikositi arctiin, Çin Farmakopesi 1'de Fructus Arctii'nin hem kimyasal belirteç bileşikleri hem de ana aktif bileşenleri olarak listelenmiştir . Son birkaç on yılda, A lappa'dan biyoaktif bileşenler , özellikle AR, iltihaplanma üzerindeki umut verici terapötik etkileri nedeniyle araştırmacıların dikkatini çekti 2 , 3 , 4 , enfeksiyon 5 , 6 ,7 , metabolik bozukluklar 8 , 9 , 10 ve merkezi sinir sistemi disfonksiyonları 11 , 12 , 13 .

          Şekil 1
          Arctium lappa L: bitki (A), meyve (Fructus Arctii) (B), kök (C) ve iki ana biyoaktif bileşik, AR (D) ve arctiin (E).

          AR ve arctiin yoğun hem de anti-enflamatuar etkileri incelenmiştir , in vitro ve in vivo model. Enflamasyon, vücudun eksojen patojenlere karşı ve enfeksiyon veya travmadan kaynaklanan doku hasarını onarmak için bir dizi koruyucu tepkisidir. Akut iltihaplanma, vazodilatasyon, sıvı eksüdasyonu ve nötrofil infiltrasyonu 14 ile karakterizedir . Şiddetli iltihaplanma organ yaralanmasına, şoka ve hatta ölüme yol açarak büyük yönetim sorunları ortaya çıkarabilir 14. Ayrıca, enflamatuar yanıt birincil uyaranı ortadan kaldırmadığında, kronik bir enflamasyon şekli ortaya çıkar ve daha fazla doku hasarına katkıda bulunur. Ateroskleroz, kanser, tip II diyabet ve Alzheimer hastalığı dahil olmak üzere bir dizi kronik hastalık, patofizyolojik olarak önemli bir enflamatuar bileşene 15 sahiptir . Bu nedenle, enflamatuar yanıtı hedefleyen yeni bileşiklerin geliştirilmesi, akut enflamasyon ve enfeksiyonun yanı sıra birçok yaygın kronik hastalığın tedavisi için faydalı olabilir. Önemli anti-enflamatuar etkilere sahip doğal bileşikler olarak AR ve arctiin'in farmakolojisi üzerine çalışmalar, yeni anti-enflamatuar terapötiklerin geliştirilmesine katkıda bulunabilir.

          Emilim, dağıtım, metabolizma ve boşaltım özellikleri dahil olmak üzere farmakokinetik profiller, potansiyel bir terapötik maddenin etkinliğini ve güvenliğini belirler. AR ve arctiin üzerinde, bunların emilimini, metabolit profillerini ve plazma konsantrasyon profillerini ve ilgili mekanizmaları açıklığa kavuşturmak için kapsamlı in vitro ve in vivo çalışmalar yapılmıştır. Bu çalışmaların sonuçları, AR ve arctiin'in farmakokinetik özellikleri hakkında kapsamlı veriler sunarak, bu doğal bileşiklerin potansiyel anti-enflamatuar terapötikler olarak kullanımı için daha fazla optimizasyon stratejisine yol açar.

          AR, arctiin ve A lappa'ya yönelik araştırma ilgisi hızla artmasına rağmen, farmakolojik özellikleri hakkında yayınlanmış az sayıda inceleme makalesi bulunmaktadır. Bu makalede, AR ve arktiinin farmakolojisine, özellikle bunların anti-enflamatuar etkilerine, farmakokinetik özelliklerine ve klinik etkinliğine genel bir bakış sağlamayı amaçlıyoruz.

          Bitkilerde AR ve arktiin dağılımı
          AR ve arctiin, dibenzilbütan iskeletleri ile karakterize edilen bir fitoöstrojen sınıfı olan lignanlar ailesine aittir. Lignanlar ilk olarak bitkilerde tanımlandı ve ligninin öncüsü olarak bitki hücre duvarının inşasında rol oynadığına inanılıyor. AR ve arktiin içerikleri ve toplam lignanlar, tüm bitki parçaları 16 arasında A lappa meyvesinde en yüksek olarak bulundu . AR ve yaklaşık% 0.5 -2% hesaba arctiin ( ağırlık / ağırlık ) ve% 2 -10% ( ağırlık / ağırlık ) meyve, kuru ağırlık, sırasıyla, menşe, hazırlama yöntemleri, ve diğer faktörlere bağlı olarak 17 , 18. AR, muhtemelen umut verici terapötik aktiviteleri nedeniyle düzinelerce başka şifalı bitkide belirteç bileşik olarak kabul edilir 19 , 20 . AR ve arktiin, sadece A lappa'da değil, aynı zamanda 38'den fazla diğer bitki türünde tanımlanmıştır; bunların arasında% 71'i Asteraceae familyasına aittir.tablo 1Aspleniaceae, Asteraceae, Convolvulaceae, Linaceae, Oleaceae, Styracaceae, Taxacea ve Thymelaeaceae dahil sekiz familyadan farklı bitki türlerinde AR ve arktiinin dağılımını özetler. Asteraceae familyasında, Centaurea , AR ve arktiin içeriklerinin A lappa'dakinden daha düşük olmasına rağmen, birçok AR ve arktiin içeren bitkileri içeren bir cinstir . Meyveler ve tohumlar yüksek seviyelerde AR ve arktiin 2 , 21'e sahipken, çiçek, yapraklar, gövde ve kökler gibi diğer kısımlar düşük seviyelere sahipti (tablo 1). Da gösterildiği gibitablo 1AR- ve arktiin içeren bu bitkilerin çoğu, büyüme alanlarında tıbbi bitkiler olarak kaydedilir ve romatizmal artrit, enflamatuar hastalıklar, enfeksiyon ve diğerleri gibi hastalıkların tedavisi için iyi bilinmektedir. tablo 1

          AR veya arctiin içeren bitki türleri ve tıbbi kullanımları.
          Aspleniaceae Asplenium trichomanes Yaprak AR Yaprak balgam söktürücü, öksürük önleyici ilaç, müshil ve emmenagog olarak İtalyan halk tıbbında ve Kuzey Amerika'da düşük olarak kullanılır. 89
          Asteraceae Arctium lappa Meyve Kökü Kök Çiçeği Arctiin (% 2 -% 10), AR (% 0,5 -% 2) Arctiin (% 0,04) Arctiin (% 0,06) Arctiin (% 0,05), AR (% 0,05) Kökler geleneksel olarak boğaz ağrısı gibi hastalıkları ve kızarıklık, çıban ve çeşitli cilt problemleri gibi enfeksiyonları tedavi etmek için kullanılır. Tohum ve meyveler cilt rahatsızlıkları için olduğu kadar geleneksel Çin tıbbının soğuk / grip formüllerinde de kullanılmaktadır. 2 , 21 , 90 , 91 , 92 , 93
          Arctium tomentosum Kök Tohumu Arctiin (% 0.68) Arctiin (% 10.3), AR (% 0.2) Kök ve yaprak, Çin'in Sincan eyaletinde romatizma ve deri parestezisi tedavisinde kullanılmaktadır. 94
          Carduus mikropterus Hava araçları parçaları Arctiin, AR Bu tür için tıbbi kullanım bildirilmemiştir. 95
          Centaurea affinis Hava araçları parçaları AR (% 0,007) Belirli türler için kullanım bildirilmemiştir. 96
          Centaurea americana Tohum Arctiin (% 0,2), AR (% 0,015) Centaurea cinsinin birçok türü uzun süredir geleneksel tıpta diyabet, ishal, romatizma, sıtma, hipertansiyon vb. Tedavi etmek için kullanılmaktadır. 95 96 97
          Centaurea arenaria Bütün bitki Arctiin, AR 98
          Centaurea cuneifolia bütün bitki AR 97 , 99
          Centaurea dealbata Meyve Arctiin, AR 100
          Centaurea macrocephala Tohum Arctiin (% 0.3) 101
          Centaurea nigra Tohum Arctiin (% 0,3), AR (% 0,06) 102
          Centaurea phrygia Çiçek AR 103
          Centaurea ptosimopappa Hava araçları parçaları AR 104
          Centaurea scabiosa Meyve AR 100
          Centaurea sclerolepis Meyve Arctiin 97 , 100
          Centaurea scoparia Hava araçları parçaları AR 105
          Centaurea schischkinii Tohum Arctiin, AR 19 , 96
          Centaurea scoparia Hava araçları parçaları AR (% 0,004) 106
          Centaurea tweediei Hava araçları parçaları AR 97 , 107
          Cirsium oleraceum Meyve Arctiin (% 3,9), AR (% 0,1) Bu tür için tıbbi kullanım bildirilmemiştir. 108
          Cirsium palustre Meyve Arctiin (2.8%), AR (0.07%) No medical use has been reported for this species. 100
          Saussurea conica Whole plant AR No medical use has been reported for this species. 109
          Saussurea medusa Aerial part Arctiin, AR (0.7%) The aerial part has been used for the treatment of rheumatoid diseases in Northwest China and Nepal. 55
          Saussurea salicifolia Aerial part Arctiin, AR The aerial part has been used to treat gynaecological diseases, hepatitis, and gallbladder disorder in Mongolian traditional medicine. 110,111
          Saussurea involucrata Seed Arctiin (0.24%) No medical use has been reported for this species. 112
          Onopordum cynarocephalum Aerial part AR A decoction or a tea of the whole plant is used in folk medicine for digestion, cough sedating, and in biliary diseases in Lebanon. The decoction or infusion of flowering tops is used for the alleged treatment of malarial fever and for washing exanthematic skin. 113
          Onopordon laconicum Aerial part AR No medical use has been reported for this species. 114
          Onopordon sibthorpianum Aerial part AR No medical use has been reported for this species. 114
          Convolvulaceae Ipomoea cairica Whole plant AR No medical use has been reported for this species. 42
          Linaceae Linum usitatissimum Seed AR Traditionally been used for the management of diarrhea and gastrointestinal infections. 115
          Oleaceae Forsythia intermedia Flower, leave Arctiin No medical use has been reported for this species. 116
          Forsythia koreana Fruit Arctiin, AR Forsythia fruits from the three species are known in China, Korea, and Japan as an anti-inflammatory, diuretics, antidote, and anti-bacteria medicine in traditional herbal medicine. 25,33
          Forsythia suspense Fruit AR (0.36%) 25
          Forsythia viridissima Fruit, flower Arctiin, AR 8,116,117
          Styracaceae Styrax japonica Stem bark Arctiin The stem bark has been used to treat inflammatory diseases. 118
          Taxaceae Torreya nucifera Bark Arctiin, AR Meyveler, Kore'de tenya istilasının tedavisi için halk hekimliğinde yaygın olarak kullanılmaktadır. 119
          Torreya jackii Yapraklar AR Bu tür için tıbbi kullanım bildirilmemiştir. 120
          Thymelaeaceae Wikstroemia indica Bütün bitki AR (% 0,06) Çin'de klinik uygulamada antipiretik, detoksik, balgam söktürücü, vermifüj ve düşük yapıcı ajan olarak uzun süredir kullanılmaktadır. 121
          Ayrı bir pencerede aç AR ve arktiin'in enflamatuar hastalıklara etkisi


          AR ve arktiinin akut inflamasyon ve mekanizması üzerine etkisi


          Çok sayıda çalışma, A lappa'nın geleneksel Çin bitkisi 22 , 23 , 24'e odaklanan çoğu araştırmada AR'ye atfedilen anti-enflamatuar aktiviteler sergilediğini bulmuştur . Anti-enflamatuar etki ve AR'nin bildirilen mekanizması şu şekilde özetlenmiştir:Tablo 2. Tablo 2

          AR'nin antiinflamatuvar etkileri ve ilgili mekanizmaları ile ilgili çalışmaların özeti.
          LPS kaynaklı iltihaplanma RAW264.7 0,01 ila 1 μmol / L NO üretiminin bastırılması İNOS protein ekspresyonunun inhibisyonu; IκBα fosforilasyonunun ve p65 nükleer translokasyonunun bastırılması 30
          0,01 ila 1 μmol / L NR TNF-α üretiminin ve mRNA seviyesinin azalması; AP-1 ve konsensüs oligonükleotidi arasındaki bağlanmanın inhibisyonu; fosforilasyonun inhibisyonu ve MAPK'lerin aktivasyonu 36
          0,1 ila 10 μmol / L NO ve PGE2 üretiminin engellenmesi İNOS ve COX-2 ifadesinin azaltılması; NF-KB ekspresyonunun ve bağlanmasının inhibisyonu; IκB, IKK fosforilasyonunun bastırılması ve MAPK'lerin aktivasyonu 33
          0,3 ila 32 μmol / L NO üretiminin engellenmesi TNF-α üretiminin engellenmesi 22
          10 ila 50 μmol / L İNOS aktivitesinin engellenmesi; COX-2 aktivitesi üzerinde hafif inhibisyon İNOS ekspresyonunun, IL-1 p ve IL-6 gen ekspresyonunun bastırılması; JAK, STAT1 ve STAT3'ün fosforilasyonunun ve çekirdek translokasyonunun azaltılması 4
          50 μmol / L İNOS aktivitesinin engellenmesi İNOS ifadesinin bastırılması; iNOS'un CHIP ile ilişkili proteazomlar tarafından her yerde bulunmasının ve bozulmasının teşvik edilmesi 32
          3 ila 100 μmol / L İNOS aktivitesinin engellenmesi; COX-2 aktivitesi inhibisyonu yok İNOS ifadesinin bastırılması; TNF-α ve IL-6 üretiminin engellenmesi 31
          U937 1 ila 16 μmol / L NR TNF-α üretiminin engellenmesi 22
          Fareler periton makrofajı 10 ila 20 μmol / L NR IL-1 and, IL-6 ve TNF-a seviyesinin artmış IL-10 ve CD204 ile azalması; NF-κB aktivasyonunun ve p65 nükleer translokasyonunun inhibisyonu; PI3K ve AKT fosforilasyonunun bastırılması 2
          Silika kaynaklı iltihaplanma RAW264.7 0,1 ila 10 μmol / L ROS üretiminin engellenmesi NR 25
          Concanavalin A ve LPS kaynaklı proliferasyon Mice primary splenocyte 0.5 to 16 μmol/L Inhibition of T cell and B cell proliferation NR 22
          Anti-CD3/CD28 Ab induced proliferation Primary human T lymphocyte 8.25 to 25 μmol/L Inhibition of lymphocytes proliferation Suppression of IL-2 and IFN-γ production and gene expression; decrease of NF-AT-mediated reporter gene expression 3
          TGF-β1-induced EMT-like changes in renal tubular epithelial cells Human proximal tubular cell line HK-2 0.5 to 1 μmol/L Protection against TGF-β1-induced MCP-1 upregulation and the resulting EMT-like phenotypic changes Inactivation of the ROS/ERK1/2 MAPK/NF-κB pathway 122
          TNF-α induced inflammation BEAS-2B cells 50 μmol/L NR Inhibition of PI3K/AKT and Ras/MAPK pathways; inhibition of NF-κB activation 35
          Acetic acid-induced inflammation Rats 12.5, 25, 100 mg/kg, po, single dose Decrease of writhing response and capillary permeability accentuation NR 25
          Arachidonic acid-induced ear edema Rats 0.1–1 mg/ear painting, single dose Decrease of edema volume, tissue MPO and EPO activities NR 25
          Carrageenan-induced paw edema Rats 10, 30, 100 mg/kg, po, single dose Decrease of paw edema volumn NR 25
          LPS-Induced acute lung injury Rats 30, 100 mg/kg, iv, single dose Reduced histological damage, myeloperoxidase activity, and wet-to-dry weight ratio of lung tissues Decrease of TNF-α, IL-1β, and IL-6 levels; down-regulation of NF-κB and p65 expression; activation of AMPKa 37
          Mice 50 mg/kg, ip, single dose Decreased infiltration of inflammatory cells into BALF; production of pro-inflammatory cytokines; reduced the malondialdehyde level; increased superoxide dismutase and catalase activities and glutathione peroxidase/glutathione disulfide ratio in the lung Significantly reduction of NO production and iNOS expression; enhancement of heme oxygenase-1 expression, and decrease of MAPKs phosphorylation 27
          LPS-induced colitis Mice 5 mg/kg, ip, single dose NR Suppression of blood IL-1β and TNF-α level TNBS-induced colitis 2
          Mice 30, 60 mg/kg, po, qd, 3 days Reduced loss of body weight, colon shortening, macroscopic scores and MPO activity Inhibition of IL-1β, TNF-α and IL-6 expression and increase of IL-10 and CD204 expression; inhibition of NF-κB activation, as well as PI3K, AKT and IKKβ phosphorylation 2
          Dextran sulphate sodium-induced colitis Mice 25, 50 mg/kg, po, qd, 10 days Reduced loss of body weight, disease index and histological damage; recovered intestinal epithelial cells; decreased infiltration of neutrophils and macrophages Down-regulation of cytokines expressions, including TNF-α and IL-6 at protein and mRNA levels; suppression of MAPKs phosphorylation and NF-κB activation; blockage of Th1 and Th17 responses; inhibition of mTORC1 associated with down-regulation of Th1/ Th17 responses 26,123
          Convection enhanced delivery induced brain injury Mice 20, 40, 80 mg/kg, po, qd, 14 days Reduced brain water content and hematoma; accelerated wound closure; reduced number of allograft inflammatory factor and MPO-positive cells Allogreft enflamatuar faktör ve MPO-pozitif hücrelerin sayısında azalma, TNF-α ve IL-6 seviyesi; IL-10 seviyesinin yükselmesi 28
          Ayrı bir pencerede aç
          Kısaltma: iv: intravenöz uygulama; p o: oral uygulama; ip: intraperitoneal; qd: günde bir kez. NR: rapor edilmedi.

          AR'nin anti-enflamatuar etkileri, lokal ödem, kolit, akut akciğer hasarı ve beyin travması dahil olmak üzere çeşitli hastalık modellerinde gösterilmiştir. AR, çeşitli uyarıcılar tarafından uyarılan sıçanların lokal doku iltihabında kıvranma tepkisi, kılcal geçirgenlik vurgusu ve ödem hacmi gibi semptomları hafifletmede etkiliydi 25 . AR'nin MAPK, HO-1 ve iNOS sinyallemesinin baskılanması yoluyla LPS kaynaklı akut akciğer hasarına karşı koruyucu etkileri gözlendi 26 , 27. Ayrıca, AR, lökositlerin yerel dokulara sızmasını, tipik bir akut enflamasyon işareti olarak azaltmıştır. Bu, çeşitli kolit fare modellerinde miyeloperoksidaz (MPO), eozinofil peroksidaz (EPO) ve farklılaşma kümesi 68 (CD68), nötrofil, eozinofil ve makrofaj göstergelerinin sırasıyla 2 , 26 , 28 azalması ile gözlenmiştir . Buna ek olarak, AR azaltılmış beyin suyu içeriği ve hematom ve çeşitli enflamatuar faktörlerin ve MPO-pozitif hücrelerin 28 sayılarının düzenlenmesi yoluyla farelerde konveksiyonla arttırılmış teslimatta beyin hasarına neden olan hızlandırılmış yara kapanması .

          AR'nin anti-enflamatuar etkisine ilk olarak, hem ekspresyon hem de aktivite seviyelerinde indüklenebilir nitrik oksit sentazın (iNOS) inhibisyonu yoluyla NO üretiminin bastırılması yoluyla aracılık edildiği gösterilmiştir. Bu bulgular , birincil olarak RAW264.7 hücrelerinin 22 , 29 , 30 , 31 , 32 , ölümsüzleştirilmiş bir murin makrofaj hücre hattının lipopolisakkarit (LPS) ile indüklenmiş enflamatuar modeli üzerinde ve U937 hücreleri üzerinde yürütülen birçok in vitro çalışmayla doğrulanmıştır. 22 , bir insan ön-makrofaj hücre hattı. AR'nin siklooksijenaz-2 (Cox-2) üzerindeki düzenleyici etkileri 31 , 33ayrıca bildirilmiştir, ancak AR'nin Cox-2 üzerindeki etkisine ilişkin tartışmalar vardır. Her iki çalışma da aynı LPS ile indüklenen RAW 267.4 hücreleri üzerinde gerçekleştirilmiş olmasına rağmen, Zhao ve arkadaşları AR'nin Cox-2 ekspresyonunu veya enzim aktivitesini 3-100 μmol / L 31'de etkilemediğini bildirirken, Lee ve arkadaşları 0.1 μmol / AR'nin L'si, COX-2 ekspresyonunu ve PGE 2 üretimini sırasıyla% 26.70 ±% 4.61 ve% 32.84 ±% 6.51 azaltabilir 33 . Diğer in vitro AR anti-enflamatuar etkileri LPS ile indüklenen primer fare splenosit çoğalma inhibisyonu 22 , anti-CD3 inhibisyonunu / CD28 antikoru ile indüklenen primer insan T lenfosit proliferasyonu 3ve M1 makrofajlarının M2 benzeri makrofajlara polarizasyonu 2 . Anti-enflamatuar etki ayrıca silika ile indüklenen ve peptidoglikan ile indüklenen enflamatuar hücre modellerinde 25 doğrulandı . Buna ek olarak, AR tip I-IV alerjik enflamasyon karşı immün modülatör etkileri bildirilmiştir 34 , hem de inhibe mast hücresi aracılı alerjik tepkiler 35 .

          AR'nin antiinflamatuvar etkisini açıklayan moleküler mekanizmalar son on yılda geniş çapta araştırılmıştır. Genel olarak, enfeksiyon veya doku hasarının algılanması üzerine, nükleer faktör KB (NF-KB) gibi kopyalama faktörleri, enflamatuar yanıta katılan genlerin ( örneğin , iNOS ve COX-2) ekspresyonunu indüklemek için aktive edilir . Sitokin aracılı besleme ileri döngüler, bu enflamatuar yanıtı 15 çoğaltabilir ve koordine edebilir . AR'nin anti-enflamatuar etkisi, potent bir atfedilmiştir in vitro ve in vivo , tümör nekroz faktörü-a (TNF-a) gibi çeşitli önemli sitokinleri ile modüle etkileri, 2 , 22 , 26 , 28 ,31 , 36 , 37 , interlökin-6 (IL-6) 2 , 26 , 28 , 29 , 31 , 37 , interlökin-1β (IL-1β) 2 , 29 , 37 ve interlökin-10 (IL-10) 2 , 28 . AR'nin interlökin-2 ve interferon-(IFN-γ) gibi diğer sitokinlerin ekspresyon seviyeleri üzerindeki inhibe edici etkileri de in vitro 3 bulundu. AR'nin sitokinler üzerindeki modüle edici etkisi için çoklu yukarı akış mekanizmaları önerilmiştir. Hem in vivo hem de in vitroçalışmalar, AR'nin p65 nükleer translokasyonunu inhibe ederek, I-fosforilasyonunu 2 , 26 , 30 , 37'yi baskılayarak, mitojenle aktive olan protein kinazların (MAPK'ler) 26 , 36 fosforilasyonunu baskılayarak ve fosfatidilinositid 3-kinazların fosforilasyonunu inhibe ederek NF-kB'yi inaktive ettiğini gösterdi. (PI3K) ve protein kinaz B (AKT) 2 , 26 . Önerilen diğer mekanizmalar arasında Janus kinaz (JAK) -sinyal dönüştürücüsünün baskılanması ve transkripsiyon 3 (STAT3) yolunun aktivatörü 4 , 29 , iNOS sentazın Hsc70-etkileşimli protein (CHIP) ile ilişkili proteazomun karboksil terminali aracılığıyla bozunmasının teşvik edilmesi yer alır.32 ve adenozin 5p-monofosfat (AMP) ile aktive edilmiş protein kinazın (AMPKa) aktivasyonu 37 . Bununla birlikte, arctiin'in anti-enflamatuar etkileri üzerine çok az çalışma vardır. Üç çalışmada, arctiin'in in vitro ve in vivo 33 , 38 , 39 AR'ninkilere benzer anti-enflamatuar etkilere sahip olduğu bildirildi.

          AR ve arktiin'in eksojen patojenlere etkisi
          AR, arctiin ve A lappa ayrıca mikroorganizma üzerinde inhibe edici etkiler gösterdi (Tablo 3), virüsler ve bakteriler dahil, enflamatuar tepkiler için ortak eksojen uyaranlar. Çalışmalar, Apa'nın anti-viral etkilerini ana bileşen AR'ye bağladı . AR iki influenza A karşı güçlü bir anti-viral aktiviteye sahip oldukları bildirilmiştir , in vitro ve in vivo olarak ayarlar ve AR anti-grip etki mekanizması, viral replikasyonu üzerinde direkt bir inhibisyon etkisi ile ilgili olan 5 , 6 , 40 . Ayrıca, AR'nin insan immün yetmezlik virüsü ve Japon ensefalit virüsü gibi daha ölümcül patojenlere karşı koruyucu etkileri de in vitro ve in vivo modellerde rapor edilmiştir 7 , 41, 42 , 43 . AR, Helicobacter pylori bakterileri üzerinde önleyici etkiler gösterdi , ancak bu etki, Moğol gerbillerinde 44 mide karsinojenezini hafifletmek için yeterli değildi . A lappa'nın Escherichia coli ve Pseudomonas aeruginosa gibi patojenlere karşı diğer anti-bakteriyel aktivitelerinin tümü, in vitro disk difüzyon modelleri 45 , 46 , 47 , 48'de bitkinin özü kullanılarak gösterilmiştir . Ek olarak, Apa'nın mantarlar gibi diğer mikroorganizmalar üzerindeki inhibitör etkileri de gösterilmiştir.46 . Bununla birlikte, bu etkilerin AR'ye atfedilip atfedilmediği ve arctiin hala belirsizdir. Tablo 3

          AR ve arktiinin eksojen patojenlere karşı farmakolojik etkisine ilişkin çalışmaların özeti.
          Japon ensefalit virüsü (JEV) AR BALB / c fareler 10 mg / kg, ip AR tedavisi, JEV enfeksiyonundan tam koruma sağladı, virüs titrelerini azalttı ve nöron kurtarma ve gliozu azaltıcı etkileri gösterdi. 41
          AR Fare Neuro2a hücreleri % 0.1 AR viral titreyi düşürdü. 41
          İnsan immün yetmezlik virüsü (HIV) AR HTLV-III B / H9-Jurkat hücre sistemi 0,5 μmol / L HIV-1 proteinleri p17 ve p24'ün ekspresyonu ve ters transkriptaz aktivitesi, AR tarafından inhibe edildi. 42
          AR 3′ işleme ve entegrasyon testleri 100 μmol / L AR, proviral DNA'nın hücresel DNA genomuna entegrasyonunu bastırdı, ancak bölünme (3′-işleme) ve entegrasyon (iplik transferi) deneylerinde etkisizdi. 43
          AR CHME5 hücreleri 5–20 μmol / L AR, HIV virüsü tip 1 Tat ifade eden CHME5 hücrelerinin sitoprotektif fenotipini ortadan kaldırmak için yukarı akış PI3K enzimini düzenledi. 7
          İnfluenza A Arctiin BALB / c fareler 5 mg / gün, p o Arctiin tedavisi ile ölümcül enfeksiyon azaldı, virüs üretimi azaldı, antikor yanıtı yükseldi. 5
          AR NIH fareler 10, 100 μg / kg, p o Viral enfeksiyona bağlı akciğer konsolidasyonu, AR tarafından önemli ölçüde inhibe edildi. Enfekte farelerin hayatta kalma süresi, AR tedavisi ile uzatıldı. 6
          AR MDCK hücreleri 5, 25, 50 μmol / L IC 50 AR 3.8 umol / L ve plak verim azaltma analizi vasıtasıyla da 2,9 umol / L idi. AR'nin oseltamivir ile sinerjistik etkisi bulundu. 5
          AR Hemaglutinasyon titresi 6,7–53,6 μmol / L Hemaglutinasyon titresi inhibe edilmiş olup, AR'nin influenza virüsü replikasyonuna karşı doğrudan inhibe edici etkiyi göstermektedir. 40
          Helikobakter pilori AR Moğol gerbil diyette 10 μmol / L,% 0.1 AR, H. pylori kolonilerinin 10 μmol / L'de inhibe edici etkisini gösterdi, ancak neoplaziyi in vivo zayıflatmada başarısız oldu . 44
          domuz circovirus tip 2 AR Fareler 200 μg / kg, ip Akciğerler, dalaklar ve kasık lenf düğümlerinde PCV2 proliferasyonunun önemli ölçüde inhibisyonu. 124
          Ayrı bir pencerede aç
          Kısaltma: ip: intraperitoneal enjeksiyon; p o: oral uygulama.

          AR ve arctiin'in kronik hastalıklarda anti-enflamatuar aktiviteleri


          AR ve arktiin, kısmen anti-enflamatuar aktivitelerinden dolayı metabolik bozukluklar ve merkezi sinir sistemi disfonksiyonları gibi bazı kronik hastalıklar üzerinde faydalı etkilerle ilişkilendirilmiştir. AR ve arctiin, çeşitli hücre hatları 49 , 50 , 51 , ob / ob fareleri ve streptozotoksin (SZT) ile indüklenen diyabetik sıçanlar 8 , 9 , 10'da metabolik bozuklukları iyileştirme üzerindeki etkilerini gösterdi . AR'nin nöroprotektif etkileri, kültürlenmiş nöron hücreleri, serebral iskemi sıçanları, hafıza yetersizliği fareleri, farelerde deneysel otoimmün ensefalomiyelit, Ap ile indüklenen AD fareleri ve transgenik Alzheimer hastalığı fareleri 11 , 12 üzerinde gösterilmiştir., 13 , 52 , 53 . Serbest radikalleri temizlemek, pro-inflamatuar sitokinleri aşağı düzenlemek, AMPK ve PPAR-γ / ROR-γt sinyalini düzenlemek, Tau hiperfosforilasyonunu azaltmak ve Aβ üretimini inhibe etmek gibi bu nöroprotektif etkiler için birden fazla mekanizma önerilmiştir 11 , 12 , 13 , 52 , 53 , 54 . Ek olarak, AR ve A lappa , çeşitli kanser hücre dizileri üzerinde potansiyel anti-kanser aktivitelerini göstermelerine rağmen , in vivo modellerde 21 , 55 , anti-kanser aktiviteleri için hala yeterli kanıt bulunmamaktadır.56 , 57 , 58 , 59 .

          Özet olarak, AR en güçlü biyoaktif bileşen olarak bildirilmiştir bir Lappa arctiin biyoaktiviteleri iki bileşiklerini değerlendirmek çoğu raporda AR'nin daha düşük iken, çalışmaların çoğunda. AR, enflamatuar tepkiler üzerinde güçlü etkiler gösterdi. AR'nin anti-enflamatuar etkisi, bazı bulaşıcı durumları yönetmek için anti-viral etkisiyle sinerjik olarak işlev görebilir. Bununla birlikte, enflamatuar yanıtlar ayrıca çeşitli kronik hastalıkların ilerlemesinde bir role sahiptir ve AR, metabolik bozukluklar ve merkezi sinir sistemi disfonksiyonları dahil olmak üzere bu kronik hastalıklar için yardımcı bir tedavi olarak hizmet edebilir.

          AR ve arctiin'in farmakokinetik özellikleri
          AR'nin umut verici terapötik potansiyeli nedeniyle aldığı araştırma ilgisine rağmen, AR ve arctiin'in biyofarmasötik ve farmakokinetik araştırmaları nadirdir. Bu bölümde, arktiin ve AR'nin biyotransformasyonuna odaklanarak, emilim, dağılım, metabolizma ve boşaltım özellikleri dahil olmak üzere arctiin ve AR'nin farmakokinetik özelliklerini tartışacağız. Ayrıca, çeşitli uygulama yollarından sonra AR'nin farmakokinetik profilleri arasında karşılaştırma yapılacaktır.

          Arctiin'in farmakokinetik özellikleri
          AR, plazmadaki konsantrasyonunun arktiin 5 , 60 ile karşılaştırıldığında çok daha yüksek olması nedeniyle, arktiinin in vivo farmakokinetik çalışmalarının çoğunda tek metabolit olarak kabul edilmiştir . Bununla birlikte, bağırsak içeriği veya dışkı ile arctiin veya AR'nin in vitro inkübasyon çalışmaları, bağırsak mikrobiyotasının bağırsakta arktiinin AR'ye biyotransformasyonuna aracılık ettiğini ortaya çıkarmıştır 61 , 62 , ardından demetilasyon ve enterolakton oluşumuna yol açan bir dizi başka biyotransformasyon süreci ( 3 ) 63 , 64 , 65 . Wang ve diğerlerioral yolla uygulanmasından sonra, üç sıçan idrar metabolitleri ve dışkı olan 30 mg / kg arctiin (1) AR de dahil olmak üzere, (2) , enterolakton (3) ve (2R, 3R) -2- (3'-hidroksibenzil) -3- ( 3 ″, 4 ″-dimetoksibenzil) -bütirolakton, bir ara metabolit 66 (şekil 2).


          AR ve arctiin'in önemli in vivo metabolik yollarının özeti.

          AR'nin farmakokinetik özellikleri


          AR'nin farmakokinetik özellikleri şu şekilde özetlenmiştir: Tablo 4. Oral alımdan sonra, etkili AR absorpsiyonu, bir Caco-2 hücre tek tabakalı taşıma çalışmasında ve bir sıçan in situ intestinal perfüzyon modelinde ( 67 , 68) gösterilmiştir . On iki parmak bağırsağı tüm bağırsak kesimleri arasında AR en iyi emme parçası olduğu bulunmuştur 67 . Caco-2 hücre tek katmanlı modeli, 1.17 68'lik bir dışa akma oranıyla AR absorpsiyonu sırasında önemli ölçüde aktif akışın dahil olmadığını göstermesine rağmen , bir in situ intestinal perfüzyon modeli, duodenumdaki AR absorpsiyonunun ko- P-glikoprotein (P-gp) inhibitörü verapamil 67 ile tedavi , AR'nin potansiyel bir P-gp substratı olduğunu düşündürmektedir. Tablo 4

          AR'nin emilimi, dağılımı, metabolizması ve eliminasyonunun özeti.
          Emilim
          Caco-2 hücre tek tabakası 50 μg / mL AR hücre tek tabakasından (1.76 ± 0.48) × 10 −5 (apikalden bazolateral) ve (1.50 ± 0.61) × 10 −5 (bazolateralden apikal) P app ile verimli bir şekilde geçti . 68
          Yerinde SD sıçan bağırsak perfüzyon modeli 25 μg / mL AR'nin etkili absorpsiyonu, gösterilen yoğun bağırsak ilk geçiş metabolizmasıyla gözlendi. 68
          Normal ve diyabetik SD sıçanlarda yerinde intestinal perfüzyon 5, 10, 20 μg / mL AR, kolayca emilen maddelere aittir. Duodenum, AR'nin en iyi absorpsiyon segmentiydi. P eff ve K , bir AR% 60 ve verapamilin ortak tedavi duodenuma% 52 artırılmıştır. AR'nin emilimi, diyabetik sıçanlarda artmıştır. 67
          Dağıtım
          In vitro plazma inkübasyonu 0,0672, 0,269, 1,075 μmol / L R, insan, av köpeği ve sıçan dahil olmak üzere plazma ile güçlü bir bağlanma kapasitesi (% 99.8 -% 100) sergilemiştir. 69
          Wistar sıçan 0.806 μmol / kg, ih Bağırsaktaki AR konsantrasyonu en yüksekti, bunu kalp, karaciğer, pankreas ve böbrek izledi. 6 saat sonra dokularda AR birikimi yok. 69
          SD sıçan 30, 50, 70 mg / kg, p o AR hızla organlara dağıldı ve dokularda Cmax 30 dakikada gözlendi. Dalaktaki AR içeriği en yüksekti. 70
          Metabolizma ve eliminasyon
          İnsan fekal inokülum inkübasyonu 0,2 ila 0,35 mmol / L Anaerobik koşullar altında AR'nin üç metaboliti tanımlanmıştır: enterolakton ( 3 ), 3 d-demetil-4 de-dehidroksiarktigenin ve 3′-demetilarctigenin. 65
          Eubacterium ARC-2 inkübasyonu 0.6 mmol / L 24 saatlik inkübasyondan sonra AR, anaerobik koşullar altında 3 tip demetilasyon ürünü aracılığıyla 4 ′, 4′-dihidroksilenterolatona dönüştürüldü. 61 , 71
          Sıçan bağırsak içeriği solüsyonu 4 saatlik inkübasyondan sonra AR, sıçan küçük ve büyük bağırsak içerikli çözeltide stabil iken, arctigenik asit, sıçan kalın bağırsak içeriğinde arctigenin'e geri dönüştürüldü. Üç glukuronidin tamamı, karşılık gelen ana bileşiklere hidrolize edildi. 72
          Yerinde SD sıçan bağırsak perfüzyon modeli 25 μg / mL AR'nin arctigenic asit ( 4 ) ve arctigenin-4′-O-glukuronide ( 5 ) yaygın intestinal ilk geçiş metabolizması tanımlanmıştır. 68
          İnsan rekombinant paraoksonaz 1 0,27 - 134,4 μmol / L Paraoksonaz 1'in AR hidrolizinden sorumlu enzim olduğu doğrulandı. 73
          Sıçan Cyp2b1 ile V79 Çin hamster hücreleri 1 mmol / L AR, sıçan Cyp2bl'yi ifade eden hücrelerde 3p-demetil-arctigenin'e dönüştürüldü. 125
          Sıçan karaciğeri / bağırsak mikrozomu 0,269 ila 67,2 μmol / L Extensive glucuronidation of AR was observed in both liver and intestine microsome. No further glucuronidation or demethylation of arctigenic acid (4) in liver and intestine microsome. 72
          Rat liver cytosol incubation 10 nmol/L 3′-Demethyl-arctigenin was converted back to AR. 126
          Human liver/intestine microsomes 100 μmol/L AR was metabolized to 4'-O-glucuronide (5) in human liver and intestinal microsome mainly via UGT1A9, UGT2B7 and UGT2B17. 74
          Human, monkey, dog, and rat liver microsome 100 μmol/L Around 62%, 3.7%, 25.9% and 15.7% of AR remained after incubated in human, monkey, dog, and rat liver microsome for 90 min. 69
          SD rats 3 mg/kg, po Arctigenic acid (4) and arctigenin-4′-O-glucuronide (5) was identified as major metabolites in rat plasma after oral administration of AR. 4-O-demethylarctigenin was also identified in vivo. 73
          SD rats 0.48 to 2.4 mg/kg, iv; 2.4 to 12 mg/kg, po Rapid formation of arctigenic acid (4) and arctigenin-4′-O-glucuronide (5) with quick elimination of both parent and metabolites were observed after both intravenous and oral administrations. No quantifiable AR was identified after oral administration due to extensive first-pass metabolism 72
          SD rats 0.96 mg/kg, iv Arctigenin-4′-O-glukuronid ( 5 ), arctigenic asit-4′-O-glukuronid, 4-O-demetil-arctigenin -4,4′-O-di-glukuronid ve eser miktarda arctigenik asit ( 4 ) safrada 0-15 dakikada bulundu. 72
          Wistar sıçan 0.806 μmol / kg ih İlacın verilmesinden sonraki 72 saat içinde, idrar birikimli atılım oranı% 1.93 idi ve feçes ve safradaki boşaltım AR miktarı sırasıyla% 0.248 ve% 0.182 idi. 69
          Ayrı bir pencerede aç
          Kısaltma: iv: intravenöz uygulama; ih: hipodermik enjeksiyon; p o: oral uygulama.

          Sistemik dolaşıma girdikten sonra AR, plazmaya güçlü bir bağlanma kapasitesi (% 99.8 -% 100) sergilemiştir. Yüksek plazma bağlanması, insan, tazı köpeği ve sıçan 69 dahil olmak üzere çeşitli türlerde bulundu . AR'nin doku dağılımı sadece sıçanlara hipodermik veya oral uygulamadan sonra araştırılmıştır. Sıçanlara 0.806 μmol / kg AR'nin hipodermik enjeksiyonundan sonra, AR konsantrasyonları çoğu organda 0.25 saatte zirve değerlerinin 6 saatinde yaklaşık 1 / 10'una düşmüştür, bu da dokularda birikme olmadığını gösterir ve AR'nin tepe konsantrasyonu bağırsak, ardından kalp, karaciğer, pankreas ve böbrek 69. Sıçanlara 70 mg / kg AR'nin oral uygulamasından sonra, AR'nin doku konsantrasyonu 30 dakikada zirveye ulaştı ve 4 saat içinde hızla elimine edildi ve AR konsantrasyonu en yüksek dalakta, ardından karaciğer ve diğer organlarda 70 oldu .

          AR, çeşitli metabolitlere yoğun metabolizma yoluyla elimine edildi. AR'nin baskın metabolik yolları aşağıda özetlenmiştir:şekil 2. AR'nin bağırsak mikrobiyotası ile in vitro inkübasyonu, akritine benzer şekilde AR'nin, 3'-demetilarctigenin, 3'-demetil-4'-dehidroksiarktigenin gibi bir dizi demetilasyon ve dehidroksilasyon ürününe ve sonunda enterolaktona biyotransformasyona uğrayabileceğini göstermiştir. (3) 24 saat içinde anaerobik olarak 61 , 65 , 71 . Sıçanlarda, AR'nin kapsamlı ilk geçiş metabolizması, hem bağırsakta hem de karaciğerde iki ana in vivo metabolitin, yani arctigenic asit (4) ve arctigenin-4'-O-glukuronid (5) 68 , 72'nin oluşumu ile meydana geldi. , 73 , 74. Diğer in vitro ve klinik çalışmalar, benzer biyotransformasyonun insanlarda da meydana geldiğini doğruladı. AR'nin hidrolizine, plazmada 73 insan paraoksonaz 1 aracılık etti ve AR'nin glukuronidasyonuna, karaciğer ve bağırsak 74'te UGT1A9, UGT2B7 ve UGT2B17 aracılık etti . Bitkisel ürün GBS-01'in pankreas kanseri hastalarında bir faz I klinik denemesi, GBS-01'in kişi başına 12 g AR dozunda oral uygulamasından sonra, plazma konsantrasyonunun altındaki alanın arctigenin- glukuronid, AR 75'ten neredeyse 1000 kat daha yüksekti . Özellikle, AR metabolizmasının kapsamı türler arasında farklı olabilir. Li ve arkadaşları tarafından rapor edildiği gibiAR'nin yaklaşık% 62,% 3.7,% 25.9 ve% 15.7'si 90 dakika boyunca insan, maymun, köpek ve sıçan karaciğer mikrozomlarında inkübasyondan sonra kaldı 69 . SD sıçanlarda bulunan diğer küçük in vivo metabolitler arasında 4-O-demetilarctigenin, arctigenin 4-O'-sülfat, arctigenik asit-4'-O-glukuronid ve 4-O-demetil-arctigenin-4,4'-O- bulunur. di-glukuronid 72 , 73 . Hızlı oluşumun ardından, AR'nin sıçanlara hem intravenöz hem de oral uygulamasından sonra iki ana metabolitin hızlı eliminasyonu gözlenmiştir. Arctigenin-4'-O-glukuronid (5) dahil AR'nin çeşitli glukuronidasyon ürünleri safra yoluyla atıldı ve potansiyel enterohepatik dolaşım önerildi 72. AR'nin bu karmaşık metabolik yolları tanımlanmış ve sıçanların ( 72) entegre bir yarı-mekanistik farmakokinetik modeli ile doğrulanmıştır ve insan deneylerinde daha fazla doğrulama gerektirmektedir.

          AR'nin kapsamlı ilk geçiş metabolizması nedeniyle, çoğu AR'nin, tek bir bileşik olarak veya bitkisel preparatlarda aktif bileşen olarak, oral uygulamadan sonra hızla metabolize olması muhtemeldir. Da gösterildiği gibiTablo 5oral uygulamadan sonra, AR'nin plazma konsantrasyonları çok düşüktü ve hatta çeşitli hayvan modellerinde tespit edilemezdi, bu da zayıf oral biyoyararlanımı düşündürdü. Oral uygulamadan sonra insanlarda AR'nin farmakokinetik profili, bitkisel ürün GBS-01'in bir faz I klinik denemesinde araştırılmıştır. Kişi başına 12 g AR'lik bir dozda GBS-01'in oral uygulamasından sonra, pankreas kanseri hastalarının plazmasındaki en yüksek AR konsantrasyonu 66.56 ± 26.81 ng / mL ve EAA 487.97 ± 368.86 ng * h / mL idi. 75. AR'nin düşük moleküler ağırlığı ve absorpsiyon modellerinde gösterilen yüksek geçirgenliği göz önüne alındığında, AR'nin zayıf oral biyoyararlanımı esas olarak membran geçirgenliğinin sınırlamalarından ziyade kapsamlı ilk geçiş metabolizmasına bağlı olmalıdır. Bu nedenle, alternatif uygulama yollarıyla AR verilmesi, ilk geçiş metabolizmasını atlamak ve biyoaktivitelerini geliştirmek için makul olabilir. Hipodermik enjeksiyon ve dil altı uygulama dahil AR'nin uygulanmasına yönelik alternatif yollar, deney hayvanları üzerinde test edildi. Sonuçlar, oral uygulama ile karşılaştırıldığında hipodermik veya dil altı uygulamadan sonra AR'nin AUC ve biyoyararlanımının önemli ölçüde arttığını göstermiştir (Tablo 5) 69 . Bu sonuçlar, AR için uygulama yollarının optimizasyonunun, sistemik ve hedef organ maruziyetini artırarak terapötik etkinliğini potansiyel olarak iyileştirebileceğini ortaya koymuştur. Farklı uygulama yollarından sonra AR'nin daha fazla farmakokinetik / farmakodinamik çalışmaları garanti edilmektedir. Tablo 5

          Sıçan, köpek ve insanda farklı uygulama yollarından sonra AR'nin farmakokinetik parametreleri.
          Beagle köpekleri iv 0.403 Yok Yok 96 ± 24.84 15.64 ± 2.08 bir Yok 69
          sl 0.20 (2.687 μmol / köpek) 0.04 ± 0.01 60 ± 16.44 61.8 ± 19.26 6.56 ± 1.16 bir Yok
          0.403 (5.374 μmol / köpek) 0.07 ± 0.24 112 ± 53.64 70.8 ± 24.36 12.01 ± 2.26 bir % 72,5
          0.81 (10.748 μmol / köpek) 0.10 ± 0.02 130.2 ± 70.20 84 ± 34.98 23.22 ± 3.06 bir Yok
          ih 0.134 0.03 ± 0.01 60 ± 0 94.8 ± 31.74 4.76 ± 0.75 bir Yok
          0.403 0.11 ± 0.03 70.2 ± 15.48 74.4 ± 12.18 16.93 ± 5.42 bir % 108
          1.209 0.25 ± 0.04 75 ± 16.44 117 ± 25.44 35.63 ± 4.21 bir Yok
          Wistar fareleri iv 2.687 Yok Yok 217.8 ± 74.04 66.26 ± 18.7 bir Yok 69
          ih 2.687 1.26 ± 0.30 15 ± 0 116.4 ± 21.72 77.87 ± 24.67 bir % 116
          p o 2.687 Konsantrasyonlar çoğu zaman noktasında en düşük miktar tayini sınırından daha düşüktü.
          Wistar fareleri iv 0.8 0.87 ± 0.18 Yok 40.8 ± 10.0 13.1 ± 3.6 b Yok 127
          SD sıçanlar iv 0.32 Yok Yok 9.35 ± 2.15 9.32 ± 2.80 bir Yok 72
          0.64 Yok Yok 13.4 ± 2.2 19.4 ± 2.9 bir Yok
          1.61 Yok Yok 13.0 ± 1.8 54.1 ± 8.1 bir Yok
          p o 1.61, 3.22, 8.16 Ölçülebilir AR belirlenmedi.
          SD sıçanlar iv 27 Yok Yok 627.6 ± 214.8 199.8 ± 49.51 bir Yok 67
          p o 538 0.34 ± 0.04 4.32 ± 5.46 414.6 ± 107.4 116.18 ± 38.69 bir Yok
          Diyabetik sıçanlar iv 27 Yok Yok 469,2 ± 227,4 151.05 ± 46.84 bir Yok 67
          p o 538 1.22 ± 0.45 3.42 ± 0.9 322,8 ± 106,2 197.99 ± 48.28 bir Yok
          Pankreas kanseri olan insan p o 134 (3 g / kişi) 269 (6 g / kişi) 538 (12 g / kişi) 0,05 ± 0,01 0,07 ± 0,02 0,18 ± 0,07 60 ± 30 30 ± 0 52,2 ± 37,2 430,8 183,6 ± 176,4 340,8 ± 380,4 40,1 ± 33,3 b 23,0 ± 9,2 b 78,7 ± 59,5 b NA NA NA 75
          Ayrı bir pencerede aç
          Kısaltma: iv: intravenöz uygulama; sl: dil altı yönetimi; ih: hipodermik enjeksiyon; p o: oral uygulama. N / A: uygulanamaz.

          a : AUC 0-∞ ;

          b : AUC 0-t .

          Şuraya gidin: Klinik kullanımlar


          Daha önce açıklandığı gibi, AR ve arctiin, çok sayıda tescilli Çin ilacının kalite kontrolünde işaretleyici bileşikler olarak görev yaptı. Bu ürünlerin çoğu, Yinqiaojiedu kaynatma 76 , 77 , 78 , Lingyang ganmao kaynatma 79 , 80 ve Fengreganmao granülleri 81 , 82'nin çeşitli dozaj formları gibi soğuk algınlığı, grip ve ilgili semptomların tedavisi içindir . Popülerliğine rağmen, Fructus Arctii tek başına yaygın olarak kullanılmamaktadır. Bu nedenle, AR'nin klinik araştırmalara ilişkin raporlar, arctiin veya bir lappa yalnız oldukça sınırlıdır. Özetlendiği gibiTablo 6Sadece dört klinik çalışmalar AR terapötik etkileri için tespit edilmiştir, arctiin veya bir lapa çeşitli endikasyonlar. Yüksek Jadad skorlarına rağmen (3'te 2'si 5 tam skor aldı) 83 , arktiin (0.5-1 g, tid) veya Fructus Arctii'nin (20 g, tid) diyabetik nefropatiye karşı etkinliğini gösteren üç randomize kontrollü çalışma aslında rapor edildi aynı grup tarafından, benzer bir çalışma tasarımı ve doz rejimleri 84 , 85 , 86 ile . Japon Ulusal Kanser Araştırma Enstitüsü ve Kracie Pharmaceutical Co, Ltd'nin ortak sponsorluğunu yaptığı yeni bir faz I klinik çalışma, yüksek AR içeriği (GBS-01) (günlük 3 ila 12 g'a eşit doz) içeren bir oral ürünün güvenliğini doğruladı. )75 . Ayrıca,rasgele, çift kör, plasebo kontrollü bir çalışmada kuru cilt ve kaşıntı giderimi için A lappa içeren nemlendirici kremideğerlendirmek için bir çalışma protokolüyayınlandı 87 . Benzer şekilde,Hindistan'da 88'de yakın zamanda yapılan kontrolsüz bir gözlemsel girişimsel çalışmada A lappa'nın akne vulgaris'i etkili bir şekilde tedavi ettiği gösterilmiştir. AR, arctiin veya A lappa'nın anti-enflamatuar etkileriklinikte henüz doğrulanmamıştır. AR ve arctiin'in terapötik etkinliğini değerlendirmek için daha fazla randomize kontrollü çalışmalara ihtiyaç vardır. Tablo 6

          AR veya arctiin içeren ürünlerle ilgili klinik çalışmaların özeti.
          Diyabetik nefropati Fructus Arctii tozu Randomize kontrollü 2 Plasebo: 61; Tedavi: 60 20 g, tid 8 hafta İdrar albümin atılım hızı (UAER) ve 24 saatlik idrar proteini kantitatif incelemesi (UPQ), tedavi ile iyileştirildi ve bu, plasebodan önemli ölçüde daha iyi idi ( P <0.001). 86
          Tangjiang-shenkang Granülü (125 mg arctiin / g) Randomize çift kör kontrollü 5 Plasebo: 60; Düşük doz (L): 64; Yüksek doz (H): 62 L: 4 g, tid; H: 8 g, teklif 8 hafta L ve H dozunun tedavi etkinliği plasebodan daha iyiydi ( P <0.01). UAER ve UPQ, tedavi ile iyileştirildi ( P <0.05). 85
          Arctiin Granül Randomize çift kör kontrollü 5 Plasebo: 102; Tedavi: 307 500 mg / doz, tid 8 hafta Arctiin granülünün tedavi etkinliği plasebodan daha iyiydi ( P <0.01). UAER ve UPQ, tedavi ile iyileştirildi ( P <0.05). 84
          Gemsitabine dirençli gelişmiş pankreas kanseri GBS-01 Kontrolsüz Faz I klinik araştırma 0 15 3–12 g AR qd 4 hafta Dozla sınırlı toksisite gözlemlenmemiştir. Yanıt 1/15 hastada bulunurken diğer 4 hastada stabil hastalık görüldü. 75
          Ayrı bir pencerede aç
          Kısaltma: teklif: günde iki kez; tid: günde üç kez; qd: günde bir kez.

          Şuraya gidin: Sonuçlar


          Enflamatuar yanıtlar, çeşitli akut ve kronik hastalık durumlarının önemli bir parçasıdır. Anti-enflamatuar aktivitelere sahip Apa'nın en güçlü biyoaktif bileşeni olan AR, akut enflamasyona ve çeşitli kronik hastalıklara karşı ümit verici bir terapötik bileşiktir. Bununla birlikte, farmakokinetik araştırmalar, AR'nin kapsamlı ilk geçiş metabolizmasının, oral uygulamadan sonra in vivo ve klinik etkinliğini engelleyeceğini ileri sürdü . In vivo olarak optimize etmek içinve AR'nin klinik etkinliği, oral uygulama dışındaki alternatif uygulama yolları önerilmektedir. AR, akut inflamasyon ve influenza tedavisinin hızlı başlangıcına izin veren dil altı veya bukkal yollarla verilebilir; cilt durumlarının tedavisi için transdermal yollar; ve merkezi sinir sistemi işlev bozukluklarının hedeflenmesi için burun içi yol. Ek olarak, AR'nin kapsamlı ilk geçiş metabolizması ve gözlemlenen ana bileşiğe kıyasla metabolitlerin daha yüksek plazma konsantrasyonları dikkate alındığında, AR metabolitlerinin potansiyel farmakolojik etkileri araştırılmalıdır. AR'nin etkilerinin daha iyi anlaşılması için farmakokinetik ve farmakolojik özelliklerin eşzamanlı izlenmesi ile ilgili daha fazla rapor gereklidir.

          Şuraya gidin: Teşekkür


          Bu çalışma, Hong Kong Çin Üniversitesi'nden Direct Grant 3800005 ve Hong Kong, Çin Sağlık Otoritesinden 7010213 araştırma fonu tarafından desteklenmektedir.

          Şuraya gidin: Referanslar
          • Çin Farmakopesi Komisyonu, Çin Halk Cumhuriyeti Farmakopesi, Bölüm 1. Halk Tıp Yayınevi 2010. Pekin, Çin.
          • Hyam SR, Lee IA, Gu W, Kim KA, Jeong JJ, Jang SE, vd. Arctigenin , PI3K / AKT yolunu inhibe ederek ve M1 makrofajlarını M2 benzeri makrofajlara polarize ederek in vitro ve in vivo inflamasyonu iyileştirir . Eur J Pharmacol 2013; 708 : 21–9. [ PubMed ] [ Google Akademik ]
          • Tsai WJ, Chang CT, Wang GJ, Lee TH, Chang SF, Lu SC, ve diğerleri. Arctium lappa kaynaklı Arctigenin , birincil insan T lenfositlerinde interlökin-2 ve interferon gen ekspresyonunu inhibe eder . Chin Med 2011; 6 : 12. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • Kou XJ, Qi SM, Dai WX, Luo L, Yin ZM. Arctigenin, JAK-STAT sinyal yolunu baskılayarak RAW264.7 hücrelerinde lipopolisakkarit ile indüklenen iNOS ekspresyonunu inhibe eder . Int Immunopharmacol 2011; 11 : 1095–102. [ PubMed ] [ Google Akademik ]
          • Hayashi K Narutaki K, Nagaoka, Y, Hayashi, T, Uesato S. Terapötik arctiin etkisi ve arctigenin, imünokompetan ve influenza A virüs ile enfekte edilen farelerde, bağışıklığı . Biol Pharm Bull 2010; 33 : 1199–205. [ PubMed ] [ Google Akademik ]
          • Yang Z, Liu N, Huang B, Wang Y, Hu Y, Zhu Y. Arctigenin anti-influenza virüsünün in vivo etkisi . Zhongyaocai 2005; 28 : 1012–4. [ PubMed ] [ Google Akademik ]
          • Kim Y, Hollenbaugh JA, Kim DH, Kim B. Humanimmunodeficiency virus tip 1 Tat'ın sitoprotektif fonksiyonu ile taranan Novel PI3K / Akt inhibitörleri . PLoS One 2011; 6 : e21781. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Cho SH, Rhee SJ, Choi SW, Choi Y. Forsythia meyve özleri ve lignanın lipid metabolizması üzerindeki etkileri . Biofactors 2004; 22 : 161–3. [ PubMed ] [ Google Akademik ]
          • Li X, Liu C, Wei J. Diyabetik sıçanlarda amioguanidin ve Arctium lappa'nın renal doku enzimatik olmayan glikasyon ve apoptoz üzerindeki etkisi . Linchuang Heli Yongyao Zazhi 2011; 4 : 19–20. [ Google Scholar ]
          • Lu LC, Zhou W, Li ZH, Yu CP, Li CW, Luo MH, vd. Arctiin'in Sprague-Dawley sıçanlarında streptozotosin kaynaklı diyabetik retinopati üzerindeki etkileri . Planta Med 2012; 78 : 1317–23. [ PubMed ] [ Google Akademik ]
          • Zhu Z, Yan J, Jiang W, Yao XG, Chen J, Chen L ve diğerleri. Arctigenin, hem beta-amiloid üretimini hem de klirensi hedefleyen Alzheimer hastalığı modeli farelerde hafıza bozukluğunu etkili bir şekilde iyileştirir . J Neurosci 2013; 33 : 13138–49. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Fan T, Jiang WL, Zhu J, Feng Zhang Y. Arctigenin , nöroinflamasyonu inhibe ederek fokal serebral iskemi-reperfüzyon sıçanlarını korur . Biol Pharm Bull 2012; 35 : 2004–9. [ PubMed ] [ Google Akademik ]
          • Jang YP, Kim SR, Choi YH, Kim J, Kim SG, Markelonis GJ, vd. Arctigenin, kültürlenmiş kortikal nöronları, kainat reseptörüne bağlanarak glutamatın neden olduğu nörodejenerasyondan korur . J Neurosci Res 2002; 68 : 233–40. [ PubMed ] [ Google Akademik ]
          • Sherwood ER, Toliver-Kinsky T. Enflamatuar yanıtın mekanizmaları . Best Pract Res Clin Anaesthesiol 2004; 18 : 385–405. [ PubMed ] [ Google Akademik ]
          • Tabas I, Glass CK. Kronik hastalıkta anti-enflamatuar tedavi: zorluklar ve fırsatlar . Science 2013; 339 : 166–72. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Shao J Guo E, Yu X Zhao L Duan W. farklı bölgelerinde toplam lignanoids ve arctinin belirlenmesi Arctium lappa L . Zhongguo Xiandai Yingyong Yaoxue 2012; 29 : 506–8. [ Google Scholar ]
          • Shao J, Ni JN, Zhao L, Yu XH, Duan WD. Yedi farklı yerdeki dulavratotu meyvesindeki arctiin içeriğinin karşılaştırmalı çalışması . Gansu Zhongyi Xueyuan Xuebao 2009; 26 : 41–3. [ Google Scholar ]
          • Yuan Y, Dou D, Kang T. Arctiin Lappa L' nin kalitesini farklı kökenlerle değerlendirmek . Shijie Kexue Jishu-Zhongyiyao Xiandaihua 2008; 10 : 75–7. [ Google Scholar ]
          • Shoeb M, Celik S, Jaspars M, Kumarasamy Y, Macmanus SM, Nahar L, et al. Centaurea schischkinii tohumlarından benzersiz bir indol alkaloid olan schischkiniin'in izolasyonu, yapı aydınlatması ve biyoaktivitesi . Tetrahedron 2005; 61 : 9001–6. [ Google Scholar ]
          • Paska C, Innocenti G, Kunvari M, Laszlo M, Szilagyi A. Ipomoea cairica nasır kültürleri tarafından Lignan üretimi . Phytochemistry 1999; 52 : 879–83. [ Google Scholar ]
          • Awale S, Lu J, Kalauni SK, Kurashima Y, Tezuka Y, Kadota S, vd. Arctigenin'in, kanser hücrelerinin besin açlığına karşı toleransını ortadan kaldırma yeteneğine sahip bir antitümör ajan olarak tanımlanması . Cancer Res 2006; 66 : 1751–7. [ PubMed ] [ Google Akademik ]
          • Cho JY, Kim AR, Yoo ES, Baik KU, Park MH. Bir lignan bileşiği olan arctigenin'in tümör nekroz faktörü-alfa ve nitrik oksit üretimi ve lenfosit proliferasyonu üzerindeki immünomodülatör etkisi . J Pharm Pharmacol 1999; 51 : 1267–73. [ PubMed ] [ Google Akademik ]
          • Sohn EH, Jang SA, Joo H, Park S, Kang SC, Lee CH, ve diğerleri. Arctium Lappa L' den butanol ekstresinin anti-alerjik ve anti-enflamatuar etkileri . Clin Mol Allergy 2011; 9 : 4. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • Kim E, Li G, Chai O, Song C.Arctium lappa Linne'nin bileşik 48/80 ile indüklenen mast hücresi aktivasyonu ve vasküler geçirgenlik üzerindeki inhibe edici etkisi . Korece J Phys Anthropol 2004; 17 : 55–66. [ Google Scholar ]
          • Kang HS, Lee JY, Kim CJ. Forsythiae Fructus'tan arctigenin'in anti-enflamatuar aktivitesi . J Ethnopharmacol 2008; 116 : 305–12. [ PubMed ] [ Google Akademik ]
          • Wu X, Yang Y, Dou Y, Ye J, Bian D, Wei Z, ve diğerleri. Arctigenin , farelerde dekstran sülfat sodyumun neden olduğu kolonik enflamatuar yanıtı hafifletmek için Arctium lappa L meyvesinin ana etkili bileşeni olarak hareket eder . Int Immunopharmacol 2014; 23 : 505–15. [ PubMed ] [ Google Akademik ]
          • Zhang WZ, Jiang ZK, He BX, Liu XB. Arctigenin, MAPK, HO-1 ve iNOS sinyallemesinin bastırılması yoluyla bir fare modelinde Lipopolisakkarit kaynaklı pulmoner oksidatif stres ve iltihaplanmaya karşı korur . Inflammation 2015; 38 : 1406–14. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Song J, Li N, Xia Y, Gao Z, Zou SF, Kong L, ve diğerleri. Arctigenin tedavisi, iğne yerleştirildikten sonra antiinflamatuar ve anti-apoptotik bir mekanizma yoluyla beyin hasarına karşı koruma sağlar . Ön Pharmacol 2016; 7 : 182. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • Yao X, Zhu F, Zhao Z, Liu C, Luo L, Yin Z. Arctigenin, STAT3 sinyal yolunun inhibisyonu yoluyla kanser hücrelerinin cisplatine kemosensitivitesini arttırır . J Cell Biochem 2011; 112 : 2837–49. [ PubMed ] [ Google Akademik ]
          • Cho MK, Park JW, Jang YP, Kim YC, Kim SG. Makrofajlarda I-kappaBalfa fosforilasyonunun ve p65 nükleer translokasyonunun inhibisyonu yoluyla dibenzilbütirolakton lignanlar tarafından lipopolisakkarit ile indüklenebilir nitrik oksit sentaz ekspresyonunun güçlü inhibisyonu . Int Immunopharmacol 2002; 2 : 105–16. [ PubMed ] [ Google Akademik ]
          • Zhao F, Wang L, Liu K. Arctium lappa L' den bir lignan olan arctigenin'in iNOS yolunda inhibisyon yoluyla in vitro anti-inflamatuar etkileri . J Ethnopharmacol 2009; 122 : 457–62. [ PubMed ] [ Google Akademik ]
          • Yao X, Li G, Lü C, Xu H, Yin Z. Arctigenin, CHIP ile ilişkili proteazom yolu yoluyla indüklenebilir nitrik oksit sentazın degradasyonunu destekler ve enzim aktivitesini baskılar . Int Immunopharmacol 2012; 14 : 138–44. [ PubMed ] [ Google Akademik ]
          • Lee JY, Cho BJ, Park TW, Park BE, Kim SJ, Sim SS, ve diğerleri. Forsythia koreana meyvelerinden elde edilen dibenzilbütirolakton lignanlar, RAW264.7 hücrelerinde nükleer faktör-b ve mitojenle aktive edilmiş protein kinazın aktivasyonu yoluyla lipopolisakkarit ile indüklenen indüklenebilir nitrik oksit sentetaz ve siklooksijenaz-2 ekspresyonlarını zayıflatır . Biol Pharm Bull 2010; 33 : 1847–53. [ PubMed ] [ Google Akademik ]
          • Lee JY, Kim CJ. Bir fenilpropanoid dibenzilbütirolakton lignan olan Arctigenin, tip I-IV alerjik enflamasyonu ve proinflamatuar enzimleri inhibe eder . Arch Pharm Res 2010; 33 : 947–57. [ PubMed ] [ Google Akademik ]
          • Hou Y, Nie Y, Cheng B, Tao J, Ma X, Jiang M, vd. Geleneksel bir Çin tıbbı formülü olan Qingfei Xiaoyan Wan, PI3K / AKT ve Ras / MAPK yollarının düzenlenmesiyle Pseudomonas aeruginosa kaynaklı akut akciğer iltihabını iyileştirir . Açta Pharm Sin B 2016; 6 : 212–21. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Cho MK, Jang YP, Kim YC, Kim SG. Bir fenilpropanoid dibenzilbütirolakton lignan olan Arctigenin, güçlü MKK inhibisyonu yoluyla MAP kinazları ve AP-1 aktivasyonunu inhibe eder: TNF-alfa inhibisyonundaki rol . Int Immunopharmacol 2004; 4 : 1419–29. [ PubMed ] [ Google Akademik ]
          • Shi X, Sun H, Zhou D, Xi H, Shan L.Arctigenin, sıçanlarda lipopolisakkarit kaynaklı akut akciğer hasarını hafifletir . Inflammation 2015; 38 : 623–31. [ PubMed ] [ Google Akademik ]
          • Park SY, Hong SS, Han XH, Hwang JS, Lee D, Ro JS ve diğerleri. Den Lignanları Arctium Lappa ve LPS ile uyarılmış nitrik oksit üretiminin inhibe etmeleri . Chem Pharm Bull 2007; 55 : 150–2. [ PubMed ] [ Google Akademik ]
          • Wu JG, Wu JZ, Sun LN, Han T, Du J, Ye Q, ve diğerleri. Arctium lappa'dan arctiin'in sıçanlarda deneysel glomerülonefrit üzerindeki iyileştirici etkileri . Phytomedicine 2009; 16 : 1033–41. [ PubMed ] [ Google Akademik ]
          • Gao, Y, Dong X, Kang, T Zhao Cı Huang, Z, Zhang X Faaliyet in vitro arctigenin anti-grip virüsü . Zhongcaoyao 2002; 33 : 724–6. [ Google Scholar ]
          • Swarup V, Ghosh J, Mishra MK, Basu A. Bir bitki lignanı olan arctigenin kullanarak Japon ensefalitinin tedavisi için yeni strateji . J Antimicrob Chemother 2008; 61 : 679–88. [ PubMed ] [ Google Akademik ]
          • Schroder HC, Merz H, Steffen R, Muller WE, Sarin PS, Trumm S, vd. Doğal lignanların farklı in vitro anti-HIV aktivitesi . Z Naturforsch C 1990; 45 : 1215–21. [ PubMed ] [ Google Akademik ]
          • Eich E, Pertz H, Kaloga M, Schulz J, Fesen MR, Mazumder A, ve diğerleri. (-) - İnsan immün yetmezlik virüsü tip-1 integrazının inhibitörleri için bir kurşun yapı olarak Arctigenin . J Med Chem 1996; 39 : 86–95. [ PubMed ] [ Google Akademik ]
          • Toyoda T, Tsukamoto T, Mizoshita T, Nishibe S, Deyama T, Takenaka Y, vd. Bir bitki lignanı olan nordihydroguaiaretic asidin, Moğol gerbillerinde Helicobacter pylori ile ilişkili mide karsinogenezi üzerindeki inhibe edici etkisi . Cancer Sci 2007; 98 : 1689–95. [ PubMed ] [ Google Akademik ]
          • Pereira JV, Bergamo DCB, Pereira JO. Franca SdC, Pietro RCLR, Silva-Sousa YTC. Arctium lappa bileşenlerinin endodontik enfeksiyonlarda yaygın olarak bulunan mikroorganizmalara karşı antimikrobiyal aktivitesi . Braz Dentl J 2005; 16 : 192–6. [ PubMed ] [ Google Akademik ]
          • Elsayed A. Aboutabla, El-Tantawyb ME, Shamsb MM. Mısır'da yetişen Arctium lappa L'nin (Asteraceae) köklerinden, yapraklarından ve tohumlarından uçucu bileşenlerin kimyasal bileşimi ve antimikrobiyal aktivitesi . Mısır Pharm J 2013; 12 : 173–6. [ Google Scholar ]
          • Gentil M, Pereira JV, Sousa YTCS, Pietro R, Neto MDS, Vansan LP, ve diğerleri. Kanal içi sargılarda kullanılan fitoterapötik bir ajan olarak Arctium lappa'nın antibakteriyel aktivitesinin in vitro değerlendirmesi . Phytother Res 2006; 20 : 184–6. [ PubMed ] [ Google Akademik ]
          • He J, Zhao Y, Sun X, Wu Q, Pan Y. Dulavratotu ( Arctium lappa L) 'nin antibakteriyel etkileri Vibrio parahemolyticus üzerinde yoğunlaşır . Nat Prod Res Dev 2012; 24 : 381–4. [ Google Scholar ]
          • Gu Y, Sun XX, Ye JM, He L, Yan SS, Zhang HH, ve diğerleri. Arctigenin, AMPK'yi aktive ederek ER stresini hafifletir . Açta Pharmacol Sin 2012; 33 : 941–52. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Xu XL, Li Q, Pang LW, Huang GQ, Huang JC, Shi M ve diğerleri. Arctigenin, PPAR-gama / LXR-alfa sinyal yolu yoluyla THP-1 makrofajlarından kolesterol akışını teşvik eder . Biochem Bioph Res Co 2013; 441 : 321–6. [ PubMed ] [ Google Akademik ]
          • Sun Y, Zang Z, Zhong L, Wu M, Su Q, Gao X, ve diğerleri. Adiponektin reseptör agonistinin floresan polarizasyona dayalı yüksek verimli analiz kullanılarak tanımlanması . PLoS One 2013; 8 : e63354. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Li W, Zhang Z, Zhang K, Xue Z, Li Y, Zhang Z, ve diğerleri. Arctigenin, Th17 hücrelerini baskılar ve deneysel otoimmün ensefalomiyeliti AMPK ve PPAR-gama / ROR-gammat sinyali yoluyla iyileştirir . Mol Neurobiol 2016; 53 : 5356–66. [ PubMed ] [ Google Akademik ]
          • Qi Y, Dou DQ, Jiang H, Zhang BB, Qin WY, Kang K ve diğerleri. Arctigenin, abeta ile indüklenen AD farelerinde Tau hiperfosforilasyonunu azaltan PI3k / Akt / GSK-3beta yolu yoluyla öğrenme ve hafıza açıklarını azaltır . Planta Med 2017; 83 : 51–6. [ PubMed ] [ Google Akademik ]
          • Song J, Li N, Xia Y, Gao Z, Zou SF, Yan YH, ve diğerleri. Arctigenin, enflamasyonu hafifletmek için miRNA-16 ve miRNA-199a ekspresyonunu düzenleyerek insan nöroblastoma SH-SY5Y hücrelerinde mekanik travma hasarına karşı nöroproteksiyon sağlar . J Mol Neurosci 2016; 60 : 115–29. [ PubMed ] [ Google Akademik ]
          • Takasaki E, Konoshima T Komatsu K Tokuda, H, Nishino H. anti-tümör Saussurea meduza havadan kısmından lignans aktivitesi . Cancer Lett 2000; 158 : 53–9. [ PubMed ] [ Google Akademik ]
          • Zeng Y, Yokohira M, Takeuchi H, Saoo K, Yamakawa K, Matsuda Y, ve diğerleri. Arktiinin, probasin / SV40 T antijen transgenik sıçanlarda prostat karsinojenezinde önemli modifiye edici etkisinin olmaması . Cancer Lett 2005; 222 : 145–51. [ PubMed ] [ Google Akademik ]
          • Hasumura M, Ueda M. Onose Ji, Imai T, Hirose M. Arctiinin, ovariektomize edilmiş Sprague-Dawley sıçanlarında 7,12-dimetilbenz (a) antrasen kaynaklı meme tümörlerinin gelişimi üzerinde önemli bir etkisinin olmaması . Nutr Cancer 2007; 57 : 201–8. [ PubMed ] [ Google Akademik ]
          • Kato T, Hirose M, Takahashi S, Hasegawa R, Kohno T, Nishibe S, vd. Linyan, arctiin'in sıçanlarda preneoplastik karaciğer hücre odaklarının gelişiminin 17-beta etinil estradiol teşvikine etkileri . Anticancer Res 1998; 18 : 1053–7. [ PubMed ] [ Google Akademik ]
          • Hirose M, Yamaguchi T, Lin C, Kimoto N, Futakuchi M, Kono T, vd. Arktiinin dişi Sprague-Dawley sıçanlarında PhIP ile indüklenen meme, kolon ve pankreas karsinojenezine ve erkek F344 sıçanlarında MeIQx ile indüklenen hepatokarsinojenez üzerindeki etkileri . Cancer Lett 2000; 155 : 79–88. [ PubMed ] [ Google Akademik ]
          • Zheng, Y, Cai, S, Xu X, Fu S tohumlarından lignans metabolik kimyasına Dyuamical çalışmalar Arctium Lappa . Zhongguo Zhongyao Zazhi 2005; 30 : 1287–9. [ PubMed ] [ Google Akademik ]
          • Zhao YF, Şarkı FR, Zhao LP, Liu SY. Elektrosprey iyonizasyon kütle spektrometresi kullanılarak arctigenin biyotransformasyonu üzerine çalışmalar . Açta Chim Sinica 2009; 67 : 1123–6. [ Google Scholar ]
          • Jin JS, Hattori M. İnsan bağırsak bakterisi, END-2 suşu, bitki lignan metabolizması sırasında demetilasyon ve laktonizasyondan sorumludur . Biol Pharm Bull 2010; 33 : 1443–7. [ PubMed ] [ Google Akademik ]
          • Xie L, Ahn E, Akao T, Abdel-Hafez AA, Nakamura N, Hattori M. Arktiinin insan bağırsak bakterileri tarafından östrojenik ve antiöstrojenik maddelere dönüşümü . Chem Pharm Bull 2003; 51 : 378–84. [ PubMed ] [ Google Akademik ]
          • Burun M, Fujimoto T, Takeda T, Nishibe S, Ogihara Y. Sıçan gastrointestinal sistemindeki lignan bileşiklerinin yapısal dönüşümü . Planta Med 1992; 58 : 520–3. [ PubMed ] [ Google Akademik ]
          • Heinonen S, Nurmi T, Liukkonen K, Poutanen K, Wahala K, Deyama T, ve diğerleri. Bitki lignanlarının in vitro metabolizması: memeli lignans enterolakton ve enterodiolün yeni öncüleri . J Agric Food Chem 2001; 49 : 3178–86. [ PubMed ] [ Google Akademik ]
          • Wang W, Pan Q, Han XY, Wang J, Tan RQ, He F, vd. HPLC ile sıçan idrarında ve dışkıda arctiin ve metabolitlerinin eşzamanlı belirlenmesi . Fitoterapia 2013; 86 : 6-12. [ PubMed ] [ Google Akademik ]
          • Zeng XY, Dong S, He NN, Jiang CJ, Dai Y, Xia YF. Oral ve intravenöz uygulamadan sonra normal ve tip 2 diyabetik sıçanlarda arctigenin'in karşılaştırmalı farmakokinetiği . Fitoterapia 2015; 105 : 119–26. [ PubMed ] [ Google Akademik ]
          • Gao Q, Zhang Y, Wo S, Zuo Z.Arctigenin'in kapsamlı bağırsak ilk geçiş metabolizması: hem ana ilacın hem de ana metabolitlerinin aynı anda izlenmesi ile kanıtlanmıştır . J Pharm Biomed Anal 2014; 91 : 60–7. [ PubMed ] [ Google Akademik ]
          • Li J, Li X, Ren YS, Lv YY, Zhang JS, Xu XL, ve diğerleri. Sıçanlarda ve av köpeklerinde intravenöz, oral, hipodermik ve dil altı uygulamadan sonra arktigenin farmakokinetiğinin ve doku dağılımının aydınlatılması: in vitro ve in vivo bulguların entegrasyonu . Ön Pharmacol 2017; 8 : 376. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • He F, Dou DQ, Hou Q, Sun Y, Kang TG. RP-HPLC yöntemi ile sıçan plazması ve organ dokusunda arctigenin farmakokinetik çalışması . Nat Prod Res 2013; 27 : 903–6. [ PubMed ] [ Google Akademik ]
          • Jin J, Zhao Y, Nakamura N, Akao T, Kakiuchi N, Hattori M. İnsan bağırsak bakterisinin izolasyonu ve karakterizasyonu, Eubacterium sp. ARC-2, enterolakton için gerekli metabolik süreçte arctigenin demetile edebilmektedir . Biol Pharm Bull 2007; 30 : 904–11. [ PubMed ] [ Google Akademik ]
          • Gao Q, Zhang Y, Wo S, Zuo Z. Sıçanlarda intravenöz ve oral uygulamalardan sonra arktigenin farmakokinetiğinin aydınlatılması: in vitro ve in vivo bulguların yarı mekanik farmakokinetik modelleme yoluyla entegrasyonu . AAPS J 2014; 16 : 1321–33. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Gao Q, Zhang Y, Wo S, Zuo Z. Hidroliz, arctigenin için baskın in vivo metabolizma yoludur: sıçanlarda oral uygulamadan sonra LC / MS / MS ile yeni arctigenin metabolitlerinin belirlenmesi . Planta Med 2013; 79 : 471–9. [ PubMed ] [ Google Akademik ]
          • Xin H, Xia YL, Hou J, Wang P, He W, Yang L, ve diğerleri. Arctigenin in vitro glukuronidasyonundan sorumlu insan UDP-glukuronosiltransferazların tanımlanması ve karakterizasyonu . J Pharm Pharmacol 2015; 67 : 1673–81. [ PubMed ] [ Google Akademik ]
          • Ikeda M, Sato A, Mochizuki N, Toyosaki K, Miyoshi C, Fujioka R, ve diğerleri. Gemsitabine refrakter gelişmiş pankreas kanseri için GBS-01 Faz I denemesi . Cancer Sci 2016; 107 : 1818–24. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
          • Zhang S, Wang N. HPLC ile yinqiaojiedu granüllerinde arctiin içeriğinin belirlenmesi . Shanxi Zhongyi Zazhi 2012; 33 : 229–30. [ Google Scholar ]
          • Sun G, Yanling S, Li Y, Liang J. Yinqiao Jiedu hapı referans parmak izi kriterinin 4 bileşik analizi ile birleştirilmiş 3 dalga boyu ölçülü parmak izi ile kantitatif belirlenmesi . Zhongnan Yaoxue 2013; 11 : 366–71. [ Google Scholar ]
          • Ouyang J, Kang L, Hu W. HPLC ile C vitamini Yinqiao tabletlerinde forsythin ve arctiin tayini . Zhongguo Yaoshi 2008; 22 : 692–4. [ Google Scholar ]
          • Yang Q, Zhang J, Li J. Lingyangganmao tabletlerinde forsythin ve arctiin'in HPLC ile belirlenmesi . Zhongchengyao 2007; 29 : 383–5. [ Google Scholar ]
          • Li D. HPLC ile lingyangganmao tablolarında forsythin ve arctiin eşzamanlı tespiti . Shoudu Yiyao 2008; 1 : 51–2. [ Google Scholar ]
          • Zhou X Jin K, Li, T, Sha E, Meng X, Cao A. HPLC ile arctiin içinde fengre ganmao granül s belirlenmesi . Yaoxue Jinbu 2004; 28 : 327–9. [ Google Scholar ]
          • Shi C, Tu L, Cao Y. HPLC ile fengreganmao granüllerinde arktiin tayini . Yunnan Daxue Xuebao 2009; 31 : 456–8. [ Google Scholar ]
          • Jadad AR, Moore RA, Carroll D, Jenkinson C, Reynolds DJ, Gavaghan DJ ve diğerleri. Randomize klinik çalışmaların raporlarının kalitesinin değerlendirilmesi: körleme gerekli midir? Control Clin Trials 1996; 17 : 1–12. [ PubMed ] [ Google Akademik ]
          • Ma S, Liu D, Niu R, Liu R, Ji Q, Zhan J, vd. Diyabetik nefropati tedavisinde Arctiin granülün çift ​​kör, randomize, plasebo kontrollü çok merkezli faz III klinik çalışması . Zhongguo Linchuang Yaolixue Zazhi 2011; 27 : 15–8. [ Google Scholar ]
          • Ma S, Liu D, Niu R, Liu R, Ji Q, Zhan J, vd. Diyabetik nefropati tedavisinde Tangjiangshenkang granülü: çift kör, randomize, plasebo kontrollü çok merkezli bir klinik çalışma . Zhongguo Xinyao yu Linchuang Zazhi 2011; 30 : 16–9. [ Google Scholar ]
          • Zhang L, Li P, Zhang X, Wu J, Bao M. Diyabetik nefropatinin fructus arctii tozları ile tedavisi üzerine klinik gözlem . Sichuan Yixue 2011; 32 : 656–8. [ Google Scholar ]
          • Lee DH, Seo ES, Hong JT, Lee GT, You YK, Lee KK ve diğerleri. Kuru cilt ve kaşıntı için önerilen bir bitkisel nemlendirici kremin etkinliği ve güvenliği: randomize, çift kör, plasebo kontrollü bir deneme-çalışma protokolü . BMC Complement Altern Med 2013; 13 : 330. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • Miglani A, Manchanda R.Akne vulgaris tedavisinde Arctium lappa'nın gözlemsel çalışması . Homeopati 2014; 103 : 203–7. [ PubMed ] [ Google Akademik ]
          • Dall'acqua S, Tome F, Vitalini S, Agradi E, Innocenti G. Asplenium trichomanes L ekstrelerinin ve izole edilmiş bileşiklerin in vitro östrojenik aktivitesi . J Ethnopharmacol 2009; 122 : 424–9. [ PubMed ] [ Google Akademik ]
          • Liu, S, Chen K Schliemann W, Strack D. dulavratotu (yapraklarında izolasyonu ve arctiin tanımlanması ve arctigenin Arctium lappa HPLC-ESI / MS ile kombinasyon halinde poliamid kolon kromatografi yolu ile L) . Phytochem Anal 2005; 16 : 86–9. [ PubMed ] [ Google Akademik ]
          • Predes FS, Ruiz ALTG, Carvalho JE, Foglio MA, Dolder H. Arctium lappa kökü ekstraktlarının antioksidatif ve in vitro antiproliferatif aktivitesi . BMC Complement Altern Med 2011; 11 : 25. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
          • Hausott B, Greger H, Marian B.Doğal olarak oluşan lignanlar, kolorektal tümör hücrelerinde apoptozu etkili bir şekilde indükler . J Cancer Res Clin Oncol 2003; 129 : 569–76. [ PubMed ] [ Google Akademik ]
          • Chan YS, Cheng LN, Wu JH, Chan E, Kwan YW, Lee SMY, vd. Arctium lappa'nın (dulavratotu) farmakolojik etkilerinin gözden geçirilmesi . Inflammopharmacology 2011; 19 : 245–54. [ PubMed ] [ Google Akademik ]
          • Ge L, Zhang H, Tian S. RP-HPLC ile Arctium tomentosum'un farklı kısımlarından arktiin ve arctigenin içerik tayini . Zhongguo Shiyan Fangjixue Zazhi 2010; 16 : 41–3. [ Google Scholar ]
          • Carduus micropterus ssp perspinosus'tan Tundis R, Statti G, Menichini F, Delle Monache F. Arctiin ve onopordopicrin . Fitoterapia 2000; 71 : 600–1. [ PubMed ] [ Google Akademik ]
          • Janackovic P, Tesevic V, Milosavljevic S, Vajs V, Marin PD. Centaurea affinis'in seskiterpen laktonları, lignanları ve flavonları . Biochem Syst Ecol 2004; 32 : 355–7. [ Google Scholar ]
          • Shoeb M, Macmanus SM, Kumarasamy Y, Jaspars M, Nahar L, Thoo-Lin PK, vd. Americanin, Centaurea americana tohumlarından biyoaktif bir dibenzilbütirolakton lignan . Phytochemistry 2006; 67 : 2370–5. [ PubMed ] [ Google Akademik ]
          • Csapi B, Hajdu Z, Zupko I, Berenyi A, Forgo P, Szabo P, vd. Centaurea arenaria'dan antiproliferatif bileşiklerin biyoaktivite rehberliğinde izolasyonu . Phytother Res 2010; 24 : 1664–9. [ PubMed ] [ Google Akademik ]
          • Aslan Ü, Öksüz S. Centaurea cuneifolia'nın kimyasal bileşenleri . Turk J Chem 1999; 23 : 15–20. [ Google Scholar ]
          • Szokol-Borsodi L, Solyomvary A, Molnar-Perl I, Boldizsar I. On-line kromatografik yöntemlerle belirlenen olgunlaşma, çimlenme ve enzimatik hidroliz işlemleri sırasında Cynareae meyvelerinden dibenzilbütirolakton tipi lignanların optimum verimleri . Phytochem Anal 2012; 23 : 598–603. [ PubMed ] [ Google Akademik ]
          • Shoeb M, Rahman MM, Nahar L, Delazar A, Jaspars M, Macmanus SM. Centaurea macrocephala tohumlarından elde edilen biyoaktif lignanlar . DARU J Pharm Sci 2004; 12 : 87–93. [ Google Scholar ]
          • Middleton M, Cox PJ, Jaspars M, Kumarasamy Y, Nahar L, Reid R, vd. Centaurea nigra (Asteraceae) tohumlarından dibenzilbütirolakton lignanlar ve indol alkaloidleri . Biochem Syst Ecol 2003; 31 : 653–6. [ Google Scholar ]
          • Christensen LP. Centaurea türlerinden flavonlar ve diğer bileşenler . Phytochemistry 1991; 30 : 2663–5. [ Google Scholar ]
          • Çelik S, Rosselli S, Maggio AM, Raccuglia RA, Uysal I, Kisiel W, ve diğerleri. Centaurea ptosimopappa'nın hava kısımlarından guaianolides ve lignanlar . Biochem Syst Ecol 2006; 34 : 349–52. [ Google Scholar ]
          • Youssef D, Frahm AW. Mısırlı Centaurea scoparia'nın bileşenleri ; III. Hava parçalarının fenolik bileşenleri . Planta Med 1995; 61 : 570–3. [ PubMed ] [ Google Akademik ]
          • Centaurea solstitialis subs schouwii'den Bruno M, Diaz JG, Herz W. Guaianolides ve lignanlar . Phytochemistry 1991; 30 : 4165–6. [ Google Scholar ]
          • Centaurea tweediei'den Fortuna AM, De Riscala EC, Catalan CA, Gedris TE, Herz W. Sesquiterpen laktonlar . Biochem Syst Ecol 2001; 29 : 967–71. [ PubMed ] [ Google Akademik ]
          • Boldizsar I, Kraszni M, Toth F, Noszal B, Molnar-Perl I. Gaz kromatografisi-kütle spektrometresi ve sıvı kromatografi tandem kütle spektrometresi ile tamamlayıcı parçalanma patern analizi, Cirsium yabani otlarının değerli lignan içeriğini doğruladı . J Chromatogr A 2010; 1217 : 6281–9. [ PubMed ] [ Google Akademik ]
          • Fan CQ, Zhu XZ, Zhan ZJ, Ji XQ, Li H, Yue JM. Den Lignanları Saussurea conica ve NO üretimini bastırma aktivitesi . Planta Med 2006; 72 : 590–5. [ PubMed ] [ Google Akademik ]
          • Yoo JH, Lee HJ, Kang K, Jho EH, Kim CY, Baturen D, ve diğerleri. Lignanlar, Wnt / beta-katenin sinyallemesinin düzenlenmesi yoluyla hücre büyümesini inhibe eder . Food Chem Toxicol 2010; 48 : 2247–52. [ PubMed ] [ Google Akademik ]
          • Kang K, Lee HJ, Kim CY, Lee SB, Tunsag J, Batsuren D, ve diğerleri. Saussurea salicifolia'nın apoptoz ve faz II detoksifikasyon enziminin indüksiyonu yoluyla kemopreventif etkileri . Biol Pharm Bull 2007; 30 : 2352–9. [ PubMed ] [ Google Akademik ]
          • Lin HR. Tithonia diversifolia kaynaklı sesquiterpen laktonlar, peroksizom proliferatör ile aktive edilmiş reseptör agonistleri olarak işlev görür . Bioorg Med Chem Lett 2012; 22 : 2954–8. [ PubMed ] [ Google Akademik ]
          • Formisano C, Rigano D, Russo A, Cardile V, Caggia S, Apostolides Arnold N, ve diğerleri. Onopordum cynarocephalum'un fitokimyasal profili ve apoptotik aktivitesi . Planta Med 2012; 78 : 1651–60. [ PubMed ] [ Google Akademik ]
          • Lazari D, Garcia B, Skaltsa H, Pedro JR, Harvala C. Onopordon laconicum ve O-sibthorpianum'dan sesquiterpen laktonlar . Phytochemistry 1998; 47 : 415–22. [ Google Scholar ]
          • Attoumbre J Bienaime Cı Dubois K, Fliniaux MA Chabbert B Baltora-Rosset S. içinde lignans bağışık için secoisolariciresinol-uygulama karşı antikorların geliştirilmesi Linum usitatissimum tohumları . Phytochemistry 2010; 71 : 1979–87. [ PubMed ] [ Google Akademik ]
          • Tokar M, Klimek B. Forsythia çiçeklerinde ve yapraklarında lignan glikozitlerin içeriği . Açta Pol Pharm 2004; 61 : 273–8. [ PubMed ] [ Google Akademik ]
          • Lee JH, Lee JY, Kim TD, Kim CJ. Forsythia viridissima meyvelerinden dibenzilbütirolakton lignanların bilinçli kobaylarda ovalbümin yüklemesine astımatik tepkiler üzerindeki antiastmatik etkisi . Phytother Res 2011; 25 : 387–95. [ PubMed ] [ Google Akademik ]
          • Kim M, Ay HT Lee DG, Woo, E. sap kabuğundan yeni bir lignanı glikozit Styrax japonika S ve Z . Arch Pharm Res 2007; 30 : 425–30. [ PubMed ] [ Google Akademik ]
          • Jang YP, Kim SR, Kim YC. Torreya nucifera'nın nöroprotektif dibenzilbütirolakton lignanları . Planta Med 2001; 67 : 470–2. [ PubMed ] [ Google Akademik ]
          • Zhao, Y, Nookandeh A, Schneider B, güneş XF Schmitt B, STÖCKIGT J. gelen Lignanları Torreya jackii , yüksek performanslı sıvı kromatografisi, nükleer manyetik rezonans spektroskopisi durduruldu-akış tarafından tanımlanan . J Chromatogr A 1999; 837 : 83–91. [ Google Scholar ]
          • Sun L, Liu L, Yang W, Zhao T, Tong L. HPLC ile Wikstroemia indica (Linn) CA Mey'de matairesinol ve arctigenin eşzamanlı tayini . Shenyang Yaoke Daxue Xuebao 2010; 27 : 893–7. [ Google Scholar ]
          • Li A, Wang J, Zhu D, Zhang X, Pan R, Wang R.Arctigenin, monosit kemoatraktan protein-1'in dönüştürücü büyüme faktörü-beta1 ile indüklenen ekspresyonunu ve ardından reaktif oksijen türlerine bağımlı ERK / NF yoluyla epitel-mezenkimal geçişini baskılar. -böbrek tübüler epitel hücrelerinde kappaB sinyal yolu . Ücretsiz Radic Res 2015; 49 : 1095–113. [ PubMed ] [ Google Akademik ]
          • Wu X, Dou Y, Yang Y, Bian D, Luo J, Tong B, vd. Arctigenin, bir mTORC1 bağımlı yolak yoluyla Th1 ve Th17 hücrelerinin farklılaşmasını inhibe ederek anti-kolit etkinliği uygular . Biochem Pharmacol 2015; 96 : 323–36. [ PubMed ] [ Google Akademik ]
          • Chen J, Li W, Jin E, He Q, Yan W, Yang H, ve diğerleri. Geleneksel Çin tıbbında arctigenin'in domuz circovirus tip 2 üzerindeki antiviral aktivitesi . Res Vet Sci 2016; 106 : 159–64. [ PubMed ] [ Google Akademik ]
          • Kasper R, Gansser D, Doehmer J. Tek sitokrom-P450 izoformlarının ekspresyonu için genetik olarak tasarlanmış memeli hücre dizilerinde doğal olarak oluşan lignan (-) - arctigenin biyotransformasyonu . Planta Med 1994; 60 : 441–4. [ PubMed ] [ Google Akademik ]
          • Burun M, Fujimoto T, Nishibe S, Ogihara Y. Sıçan gastrointestinal sisteminde lignan bileşiklerinin yapısal dönüşümü; II. Serum lignanlar ve metabolitlerinin konsantrasyonu . Planta Med 1993; 59 : 131–4. [ PubMed ] [ Google Akademik ]
          • Zou Q, Gu Y, Lu R, Zhang T, Zhao GR, Liu C, ve diğerleri. Sıçan plazmasında arctigenin belirlemek için bir LC / MS / MS yönteminin geliştirilmesi: bir farmakokinetik çalışmaya uygulanması . Biomed Chromatogr 2013; 27 : 1123–8. [ PubMed ] [ Google Akademik ]

          Yorum yap


          • #6
            Arctium Lappa L' den butanol ekstresinin anti-alerjik ve anti-enflamatuar etkileri

            Eun-Hwa Sohn , 1 Seon-A Jang , 1 Haemi Joo , 2 Sulkyoung Park , 1 Se-Chan Kang , 3 Chul-Hoon Lee , 4 ve Sun-Young Kim 5
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
            Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır .
            Şuraya gidin:

            Öz
            Arka fon
            Atopik dermatit, eozinofiller, mast hücreleri ve T hücreleri dahil olmak üzere belirgin şekilde artmış inflamatuar hücre seviyelerinin eşlik ettiği kronik, alerjik inflamatuar bir deri hastalığıdır. Arctium lappa L . Asya'da geleneksel bir ilaçtır. Bu çalışma, A. lappa'nın (ALBE) bir butanol özütünün daha önce bildirilmemiş anti-alerjik veya anti-enflamatuar etkilere sahip olup olmadığını inceledi .

            Yöntemler
            Bu çalışma, ALBE'nin antijenle uyarılan RBL-2H3 hücrelerinde β-heksosaminidaz salınımı üzerindeki etkisini incelemiştir. ALBE tedavisinden sonra fare splenositlerinde RT-PCR, Western blot ve ELISA kullanılarak IL-4, IL-5, mitojenle aktive edilmiş protein kinazlar (MAPK'lar) ve nükleer faktör (NF) -κB'nin ConA ile indüklenen ekspresyonunu da değerlendirdik. .

            Sonuçlar
            RBL-2H3 hücrelerinde-heksosaminidaz salımının önemli ölçüde inhibe edildiğini ve ALBE tedavisinden sonra ConA ile işleme tabi tutulmuş birincil fare splenositlerinin neden olduğu IL-4 ve IL-5'in mRNA ekspresyonunu ve protein salgılanmasını bastırdığını gözlemledik. Ek olarak, ALBE (100 μg / mL) sadece NF-κB'nin transkripsiyonel aktivasyonunu değil, aynı zamanda ConA ile tedavi edilen primer splenositlerde MAPK'lerin fosforilasyonunu da bastırdı.

            Sonuçlar
            Bu sonuçlar, ALBE'nin ConA ile tedavi edilen splenositlerde MAPK'leri ve NF-κB aktivasyonunu azaltarak IL-4 ve IL-5'in ekspresyonunu inhibe ettiğini ve ALBE'nin atopik dermatit dahil alerjik hastalıkların tedavisinde faydalı etkilere sahip olabileceği hipotezini desteklediğini göstermektedir.

            Arka fon
            Atopik dermatit, kaşıntılı kronik egzama, yüksek serum IgE seviyeleri ve eozinofiller, mast hücreleri ve lenfositler dahil olmak üzere kitlesel hücresel infiltratlar ile karakterize kronik, alerjik inflamatuar bir cilt hastalığıdır [ 1 , 2 ]. Mast hücreleri, degranülasyon süreci yoluyla alerjik reaksiyonların patogenezini tetiklemede önemli roller oynadığından, degranülasyon derecesinin ölçülmesi, mast hücresi aktivasyonunun seviyesini yansıtır. Bu işlem sırasında bu hücreler tarafından salınan β-Heksosaminidazın degranülasyon derecesini belirlemek için uygun bir işaretçi olduğu bildirilmiştir [ 3]. Bir alerjen alerjik reaksiyonları tetikledikten sonra, histamin, sitokinler ve araşidonik asit türevleri dahil olmak üzere alerjik aracılar, akut ve kronik alerjik inflamasyon yanıtlarını tetikler [ 4 , 5 ]. Alerjik reaksiyona dahil olan çeşitli hücreler lezyona sızar. Bunlar arasında T helper 2 (Th2) hücreleri, atopik dermatit gelişiminde rol oynayan en önemli hücre tipidir. Th2 hücreleri, alerjik enflamasyon ve atopik dermatitte IL-4, IL-5 ve IL-13 gibi sitokinler salgılar. Th2 hücreleri tarafından salınan sitokinler, atopik ve alerjik cilt inflamasyonunda hem mast hücrelerinin hem de eozinofillerin proliferasyonuna ve aktivasyonuna yol açar ve sonuç olarak kaşıntıya ve bozulmuş cilt bariyer fonksiyonuna yol açar [ 6]. Özellikle IL-4, saf T hücrelerinden Th2 hücre alt kümesinin genişlemesine ve spesifik çevresel alerjenlere karşı IgE üretmek için B hücrelerinin izotip değişimine katkıda bulunur [ 7 ]. IL-4 ve IL-5 gibi sitokinler, alerjenlere karşı rollerine bağlı olarak alerjik reaksiyonun temsili belirteçleridir.

            Arctium lappa L . birçok ülkede yetiştirilen popüler bir yenilebilir sebzedir. Kökler gıdada yaygın olarak kullanılırken, tohumlar geleneksel tıpta diüretik, ateş düşürücü veya detoksifiye edici ajanlar olarak kullanılır [ 8 ]. Raporlar vardır C. lapa sahip anti-enflamatuar [ 9 ], serbest radikal süpürücü [ 10 ], ve antioksidan [ 11 ] bileşenleri [faaliyetleri ve bu 12 ] de desmutagenic [sahip 13 ] ve karaciğer koruyucu [ 14 ] etkiler. A. lappa ve bileşenleri bu biyolojik aktivitelere sahip olmasına rağmen , bildirilen hiçbir çalışma, anti-alerjik veya antiinflamatuar etkilerini değerlendirmemiştir.A. atopik dermatitte lappa kökü veya ilgili moleküler mekanizmalar. A. lappa'nın butanol ekstresini inceledik.(ALBE) kökleri, antijen kaynaklı β-heksosaminidaz salınımını önemli ölçüde inhibe etti. Atopik dermatit, kronik, alerjik inflamatuar bir cilt hastalığıdır ve ALBE'nin hem anti-alerjik hem de anti-inflamatuar etkilerini araştırdık. Konkanavalin A (ConA ), alerjik bir ortamda olduğu gibi Th2 sitokinleri oluşturur. Ayrıca ALBE'nin anti-enflamatuar etkilerini doğrulamak için ConA ile tedavi edilen birincil murin splenositlerde inflamasyon sırasında aktive olan NF-κB'nin translokasyonunu ve MAPK'lerin fosforilasyonunu inceledik.

            Yöntemler
            Ekstraktın hazırlanması
            Arctium lappa L'nin Kökleri . (1 kg), geri akış altında (10 L, 24 saat, iki kez)% 30 etanol ile özümlendi. Ekstrakt solüsyonları süzüldü ve sonra 40 ° C'de düşük basınç altında buharlaştırılarak 88.8 gr kuru toz elde edildi. N-heksan, AcOEt, n-BuOH ve H vermek üzere yaklaşık olarak etanol ekstraktı 50 g su, 1 L içinde yeniden süspanse edildi ve daha sonra n-heksan, AcOEt eşit hacimlerde paylaştırıldı ve n-BuOH 2 O fraksiyonlar. Bütanolik fraksiyon 22.0 g ağırlığındaydı ve numune A. lappa butanolik ekstraktı (ALBE) olarak adlandırıldı .

            Hücre kültürü ve deney hayvanları
            RBL-2H3 sıçan mast hücre çizgisi, Amerikan Tipi Kültür Koleksiyonundan (Rockville, MD, ABD) elde edildi ve% 15 fetal sığır serumu (FBS), 2 mM l- glutamin, 100 U ile minimum temel ortamda (MEM) büyütüldü. % 5 CO 2 /% 95 hava atmosferine sahip nemlendirilmiş bir inkübatörde 37 ° C'de / mL penisilin ve 100 μg / mL streptomisin . Spesifik patojen içermeyen 8-10 haftalık erkek C57BL / 6 fareleri Orient Bio'dan (Gyeonggi-do, Kore) satın alındı ​​ve 23 ± 1 ° C sıcaklıkta ve 55 ± nemde bir hayvan odasında barındırıldı. 12/12 saatlik aydınlık / karanlık döngüsüyle% 5. Farelere istedikleri kadar musluk suyu ile standart bir laboratuvar diyeti verildi .

            Hayvan bakımı ve tüm deneysel protokoller, Laboratuvar Hayvanları Araştırma Enstitüsü (ILAR) yönergelerine göre gerçekleştirildi.

            Malzemeler
            Anti-dinitrofenil (DNP) -IgE ve 4-nitrofenil N-asetil-β- d-glukozaminid Sigma-Aldrich'ten, DNP-bovin serum albümini (BSA) Biosearch Technologies'den, minimum temel ortam Invitrogen'den, fetal sığır serumu (FBS) WelGENE'den, IL-4 gibi sitokin testleri için enzim immunoassay reaktifleri ve IL-5, BD Biosciences'tan, protein tahlil kiti Bio-Rad Laboratories'den, anti-pERK, anti-ERK, anti-pJNK, anti-JNK ve anti-p-p38, Cell Signaling Technology'den, anti -p65 ve anti-p38 Santa Cruz Biotechnology'den, anti-β-aktin Sigma-Aldrich'den, anti-α-tubulin Abfrontier'den, ECL kemilüminesans sistemi GE Healthcare'den ve poliviniliden diflorür (PVDF) membranı Millipore'dan. Polimeraz zincir reaksiyonu (PCR) oligonükleotid primerleri, Bionics (Kore) tarafından özel olarak sentezlendi.

            Hücre sitotoksisitesi ve proliferasyonu için XTT testi
            Splenosit sitotoksisitesi ve proliferasyonu, üreticinin talimatlarına göre XTT test kiti kullanılarak incelenmiştir. Dalak, aseptik olarak çıkarıldı ve kültür ortamında tek bir hücre süspansiyonuna ayrıldı. Hücreler (5 x 10 5 hücre / oyuk), çeşitli ALBE konsantrasyonları ile inkübe edildi (1, 10, 100 ug / ml) T-hücresi aktivasyonu için 3 ug / mL Con A varlığında veya olmaması halinde gerçekleştirilmektedir. Hücrelerin 72 saat inkübe edilmesinden sonra, 25 μL fenazin metosülfat (PMS; elektron bağlama reaktifi) ve 25 μL XTT [2,3-bis (2-metoksi-4-nitro-5-sülfofenil) -2H karışımı -tetrazolyum-5-karboksanilid] her çukura eklenmiştir. Hücreler ayrıca XTT formazan üretimine izin vermek için 4 saat daha inkübe edildi. Absorbans, 450 nm'lik bir test dalga boyunda ve 690 nm'lik bir referans dalga boyunda bir mikroplaka okuyucusu ile belirlendi.

            β-Heksosaminidaz salım deneyi
            RBL-2H3 hücrelerinin degranülasyonu, hücre dışı ortamda salgılanan granülde depolanan enzim-p-heksosaminidazın aktivitesi ölçülerek değerlendirildi. Hücreler, 24 oyuklu plakalar (2 x 10 kültürlenmiştir 5 gece boyunca iyi hücre /). Hücreler, 37 ° C'de 16 saat süreyle anti-DNP-IgE (100 ng / mL) ile duyarlı hale getirildi. Yıkamadan sonra TGCM olan hücreler (136 mM NaCl, 2.68 mM KCI tampon, 0.36 mM NaH 2 PO 2 H 2 , O, 1 mM CaC 2 , 0.5 mM MgC! 2 , 11.9 mM NaHCOj 3, 5 mM dekstroz, 1 g / L jelatin, pH 7.4), ALBE (1, 10, 100 μg / mL) ile 30 dakika ön işleme tabi tutulmuş ve daha sonra 30 dakika süreyle DNP-BSA (1 μg / mL) ile muamele edilmiştir. 37 ° C. Hücresel süpernatantın (15 μL) alikotları, 96 kuyucuklu plakalara aktarıldı ve 60 μL substrat (1 mM p -nitrofenil-N-asetil-β- d - glukozaminid içinde sitrat 0.05 M, pH 4.5) ile 60 dakika süreyle inkübe edildi. 37 ° C'de. Hücreler, toplam p-heksosaminidaz aktivitesini ölçmek için süpernatan çıkarılmadan önce% 0.1 Triton X-100 ile lize edildi. Reaksiyon 150 uL Na eklenerek durdurulmuş 2 CO 3 -NaHCO 3tampon 0.1 M, pH 10. 405 nm'de soğurma, bir mikroplaka okuyucusu (Themo Labsystems) ile ölçülmüştür. Sonuçlar,% 0.1 Triton X-100 ile hücre lizizi ile belirlenen hücrelerin toplam β-heksosaminidaz içeriğinin yüzdesi olarak sunulmuştur.
            % Degranülasyon = OD süpernatant / (OD süpernatant + OD triton x-100 ) × 100


            NA hazırlama ve RT-PCR ile mRNA analizi
            Toplam splenositler 3 x 10 kaplandı 7hücre / mL ve ALBE (100 μg / mL) ve ConA (3 μg / mL) ile 16 saat muamele edildi. Muamele edilen hücrelerden alınan toplam RNA, üreticinin protokolüne göre TRIzol Reaktifi (Invitrogen) ile hazırlandı ve kullanılana kadar -70 ° C'de saklandı. IL-4 ve IL-5 dahil olmak üzere sitokinlerin saptanması için, toplam RNA, stimülasyon ve tedaviden sonra ekstrakte edildi. Bu çalışmada kullanılan primerlerin sekansları şöyleydi: IL-4 ileri, 5'-ATG GGT CTC AAC CCC CAG CTA GT-3 '; IL-4 ters, 5'-GCT CTT TAG GCT TTC CAG GAA GTC-3 '; IL-5 ileri, 5'-AGC ACA GTG GTG AAA GAG ACC TT-3 '; IL-5 ters, 5'-TCC AAT GCA ETİKETİ CTG GTG ATT T-3 '; GAPDH ileri, 5'-GTG GCA AAG TGG AGA TTG TTG CC -3 've GAPDH geri, 5'-GAT GAT GAC CCG TTT GGC TCC-3'.

            Sitokin üretiminin ölçümü (IL-4 ve IL-5 sekresyonu)
            Sitokin bağışıklık için, toplam splenositler 3 x 10 plakalandı 7 hücre / mL ve 16 saat Albé (100 ug / mL) ve ConA (3 ug / ml) ile muamele edilmiştir. Kültür süpernatantları toplandı ve salgılanan IL-4 ve IL-5 miktarı, BD Biosciences tarafından sağlanan protokol kullanılarak bir enzime bağlı immünosorbent testi (ELISA) kullanılarak ölçüldü.

            Hücre altı fraksiyonlama
            Sitozolik ve nükleer özler hazırlandı. Kısaca, splenositler (5 × 10 7 hücre / mL) 100 mm'lik kaplara kaplandı ve 4 saat ALBE (100 μg / mL) ve ConA (3 μg / mL) ile muamele edildi. Hasat edilen hücreler (1.5 mM MgCI, pH 7.5'te 10 mM HEPES tampon maddesi A 0.2 ml yeniden süspansiyon haline getirilmiş 2 , 10 mM KCI, 1 mM DDT,% 0.1 NP-40, 0.2 mM PMSF) içinde. Hücreler, 15 dakika boyunca buz üzerinde lize edildi ve santrifüjlendi (5,000 g , 5 dak, 4 ° C). Süpernatan, sitozolik özütler olarak toplandı. Nükleik topak tampon NP-40 eksik ile yıkanmış ve tampon C (20 mM HEPES, pH 7.5,% 25 gliserol, 0.42 M NaCI, 0.2 mM EDTA, 1.5 mM MgCl 0.025 ml yeniden süspansiyon haline getirildi 2 , 1 mM DDT 0.2 mM PMSF). Buz üzerinde 30 dakika inkübasyondan sonra, nükleer atık döndürüldü (13.000 g, 10 dak, 4 ° C). Süpernatan, nükleer özler olarak toplandı. Protein konsantrasyonu, bir protein tahlil kiti (Bio-Rad) kullanılarak ölçüldü.

            Western lekeleme
            Toplam splenositler 3 x 10 kaplandı 7hücre / mL ve ALBE (100 μg / mL) ve ConA (3 μg / mL) ile 15 dakika muamele edildi ve sonra hasat edildi ve 20 mM Tris, pH 7.6, 150 mM NaCl ve% 1 Triton X içeren bir liziz tamponunda lize edildi -100 proteaz inhibitörü kokteyli ile. Protein içerikleri, bir protein tahlil kiti (Bio-Rad) kullanılarak ölçüldü. Örnekler,% 1 p-merkaptoetanol içeren 1 x liziz tamponu ile seyreltildi. Eşit miktarlarda hücresel protein (50 ug),% 10 SDS-PAGE ile çözüldü ve nitroselüloz membranlara aktarıldı. Bloke edildikten sonra membranlar, hedef antikor ile ve ardından IgG'ye karşı yaban turpu peroksidaz ile konjuge ikincil antikor ile inkübe edildi. İmmünoreaktif proteinler, ECL Western blot saptama sistemi kullanılarak görselleştirildi. Protein seviyesi, p-aktin veya fosforile olmayan protein gibi bir yükleme kontrolüyle karşılaştırıldı.

            İstatistiksel analizler
            Her deney üç veya dört kez tekrarlandı ve temsili bir deneyin sonuçları gösterildi. Sonuçlar ortalama ± SEM olarak ifade edildi ve Student t- testi kullanılarak karşılaştırıldı . P <0,05'lik bir istatistiksel olasılık anlamlı kabul edildi (# p <0,05, ## p <0,01, * p <0,05 ve ** p <0,01).

            Sonuçlar
            ALBE, IgE ile duyarlılaştırılmış mast hücrelerinde antijen kaynaklı β-heksosaminidaz salınımını inhibe eder
            ALBE'nin β-heksosaminidaz salgılanması üzerindeki etkisini belirlemek için sıçan mast hücre hattı RBL-2H3 hücreleri kullanıldı. Başlangıçta, XTT testini kullanarak ALBE'nin RBL-2H3 hücreleri üzerindeki sitotoksisitesini ölçtük. 1-100 μg / mL arasındaki konsantrasyonlarda ALBE, 24 saatte sitotoksisiteyi önemli ölçüde etkilememiştir (Şekil​(Şekil1A).1 A). Bu nedenle, DNP-IgE ile duyarlılaştırılmış RBL-2H3 hücrelerini, sonraki deneylerde 1-100 μg / mL arasında değişen ALBE ile tedavi ettik. ALBE, 1, 10 ve 100 μg / mL'de IgE ile duyarlılaştırılmış RBL-2H3 hücrelerinde DNP-BSA kaynaklı β-heksosaminidaz salgılanmasını önemli ölçüde bastırdı ve etkiler doza bağlıdır (Şekil​(Şekil1B).1 M). Anti-alerjik bir ilaç olan ketotifen fumarat da β-heksosaminidaz sekresyonunu azalttı. Sonuçlar, ALBE'nin antijen kaynaklı mast hücre degranülasyonunu önemli ölçüde inhibe ettiğini gösterdi.

            Ayrı bir pencerede aç
            Şekil 1
            ALBE'nin RBL-2H3 hücrelerinde hücre canlılığı ve antijen kaynaklı β-heksosaminidaz üzerindeki etkileri . (A) Hücreler, 24 saat boyunca çeşitli ALBE konsantrasyonları ile işleme tabi tutuldu. Hücre canlılığı, XTT deneyi kullanılarak değerlendirildi. Absorbans, 450 nm ve 650 nm'de ölçüm verileriydi. (B) Hücreler, ortam içinde 1 ug / ml DNP'ye özgü IgE ile gece boyunca inkübasyon yoluyla duyarlı hale getirildi. Bu DNP-IgE ile duyarlılaştırılmış RBL-2H3 hücreleri, 30 dakika süreyle çeşitli ALBE konsantrasyonları ile önceden inkübe edildi ve ardından p-heksosaminidazın salınımını ölçmek için 15 dakika süreyle antijen (DNP-BSA) ile inkübe edildi. Her çubuk, dört bağımsız deneyin ortalama ± SEM'ini gösterir. ## P <0.01: kontrol grubundan önemli ölçüde farklı ** P <0.01, * P <0.05: tek başına DNP-BSA'dan önemli ölçüde farklı. KF; ketotifen fumarat.

            ALBE'nin ConA ile indüklenen primer murin splenositlerinde hücre proliferasyonu ve sitokin (IL-4, IL-5) sekresyonu üzerindeki etkileri
            ALBE'nin immünomodülatör etkisini incelemek için 72 saat boyunca birincil murin splenositlerde ALBE'nin ConA ile indüklenen T hücresi proliferasyonu üzerindeki etkilerini inceledik. ConA olmadan ALBE tedavisinin konsantrasyonu ve süresi, splenosit canlılığı üzerinde hiçbir etkiye sahip değildi (veriler gösterilmemiştir). Şekilde gösterildiği gibi​Şekil 2,2ALBE, ConA ile tedavi edilen hücrelerde 10 ve 100 μg / mL'de splenosit proliferasyonunu önemli ölçüde artırdı ( p <0.05). Ek olarak, ALBE'nin Th2 fonksiyonlarında ALBE'nin daha fazla katılımını araştırmak için RT-PCR ve ELISA testlerini kullanarak birincil murin splenositlerde IL-4 ve IL-5 gibi Th2 sitokinlerinin ekspresyonu ve salgılanması üzerindeki etkilerini inceledik. atopik dermatit benzeri cilt lezyonları. ConA ile indüklenen IL-4 ve IL-5 sekresyonu, splenositlerde ALBE tedavisi ile baskılanmıştır (Şekil​(Figür 3,3, Şekil ​Şekil 4).4). ConA'sız ALBE tedavisi, IL-4 veya IL-5 mRNA ekspresyonu üzerinde hiçbir etkiye sahip değildir (veriler gösterilmemiştir), buna karşılık ConA ile ALBE, IL-4 (% 55.3'e) ve IL-5'in (% 29.0'a) mRNA ekspresyonunu önemli ölçüde azaltmıştır. ConA ile uyarılan splenositlerle karşılaştırıldığında 100 μg / mL'de (Şekil​(Şekil3A,3 A, Şekil ​Figure4A).4A). RT-PCR sonuçlarıyla uyumlu olarak, ALBE aynı koşullar altında IL-4 (% 13.6'ya) ve IL-5'in (% 10.8'e) protein salgılanmasını inhibe etti (Şekil​(Şekil3B,3B, Şekil ​Şekil4B).4B). Bu sonuçlar, ALBE'nin T hücreleri üzerinde immünostimülatör etkilere sahip olduğunu ve antijen kaynaklı mRNA ekspresyonunu ve alerjik ve atopik reaksiyonlarla ilgili sitokinlerin üretimini anlamlı bir şekilde inhibe ettiğini göstermektedir.

            Ayrı bir pencerede aç
            şekil 2
            ALBE'nin ConA ile indüklenen birincil murin splenositlerin proliferasyonu üzerindeki etkileri .
            Splenositler, 72 saat boyunca çeşitli ALBE ve ConA (3 ug / ml) konsantrasyonları ile tedavi edildi. Hücre çoğalması, XTT deneyleri kullanılarak değerlendirildi. Absorbans, 450 nm ve 650 nm'de ölçüm verileriydi. Her çubuk, dört bağımsız deneyin ortalama ± SEM'ini gösterir. ## P <0.01: tedavi edilmeyen gruptan önemli ölçüde farklı. ** P <0.01: tek başına ConA grubundan önemli ölçüde farklı.


            Ayrı bir pencerede aç
            Figür 3

            Birincil murin splenositlerinde ALBE tarafından IL-4'ün mRNA ekspresyonları ve protein sekresyonları .
            (A) ALBE'nin IL-4'ün mRNA ekspresyonu üzerindeki etkileri. ALBE (100 ug / ml), 16 saat boyunca ConA (3 ug / ml) içeren veya içermeyen splenositlere tedavi edildi. IL-4'ün mRNA ekspresyonu, yöntemde açıklanan RT-PCR ile değerlendirildi. Her çubuk, üç bağımsız deneyin ortalama ± SEM'ini gösterir. (B) ALBE'nin IL-4'ün protein salgılanması üzerindeki etkileri. ALBE (100 ug / ml), 16 saat boyunca ConA (3 ug / ml) içeren veya içermeyen splenositlere tedavi edildi. IL-4'ün protein salgılanması, yöntemlerde açıklanan ELISA ile değerlendirildi. Her çubuk, dört bağımsız deneyin ortalama ± SEM'ini gösterir. ## P <0.01: tedavi edilmeyen gruptan önemli ölçüde farklı. ** P <0.01: tek başına ConA grubundan önemli ölçüde farklı.


            Ayrı bir pencerede aç
            Şekil 4
            Birincil murin splenositlerinde ALBE tarafından IL-5'in mRNA ekspresyonları ve protein sekresyonu .
            (A) ALBE'nin IL-5'in mRNA ekspresyonu üzerindeki etkileri. ALBE (100 ug / ml), 16 saat boyunca ConA (3 ug / ml) içeren veya içermeyen splenositlere tedavi edildi. IL-5'in mRNA ekspresyonu, yöntemde açıklanan RT-PCR ile değerlendirildi. Her çubuk, üç bağımsız deneyin ortalama ± SEM'ini gösterir. (B) ALBE'nin IL-5'in protein salgılanması üzerindeki etkileri. ALBE (100 ug / ml), 16 saat boyunca ConA (3 ug / ml) içeren veya içermeyen splenositlere tedavi edildi. IL-5'in protein salgılanması, yöntemlerde açıklanan ELISA ile değerlendirildi. Her çubuk, dört bağımsız deneyin ortalama ± SEM'ini gösterir. ## P <0.01: tedavi edilmeyen gruptan önemli ölçüde farklı. ** P <0.01: tek başına ConA grubundan önemli ölçüde farklı.

            ALBE'nin ConA ile indüklenen primer murin splenositlerinde MAPK'lerin NF-κB aktivasyonu ve fosforilasyonu üzerindeki etkileri
            4 saat süreyle ALBE artı ConA ile muameleden sonra çekirdekte artan NF-κB (p65) ekspresyonu gözlendi (Şekil ​(Şekil 5).5). Çekirdekteki NF-KB (p65) translokasyonunun nispi yoğunluğu, kontrolde ConA yokluğuna kıyasla ConA varlığında% 6.3'e yükseldi. Bunun aksine, çekirdekteki NF-κB (p65) translokasyonunun nispi yoğunluğu, ConA varlığında 100 μg / mL ALBE ilave edildikten sonra tek başına ConA tedavisine kıyasla önemli ölçüde% 8.7'ye düşmüştür. Bu veriler, ALBE'nin NF-KB aktivasyonunu zayıflattığını ve aşağı akış IL-4 ve IL-5 üretimini etkileyebileceğini gösterir. ALBE, p38, JNK ve ERK gibi MAP kinazların ConA ile indüklenen fosforilasyonunu inhibe eder (Şekil​(Şekil 6).6). ALBE'nin sadece NF-κB'nin aktivitesindeki ConA ile indüklenen artışı değil, aynı zamanda MAPK'lerin fosforilasyonunu da zayıflattığını bulduk ve bu sonuçlar, ALBE'nin NF-κB ve MAPKs sinyal yolu yoluyla alerjik ve atopik inflamasyonu önleyebileceğini öne sürüyor.

            Ayrı bir pencerede aç
            Şekil 5
            ALBE'nin ConA ile indüklenen birincil fare splenositlerinde NF-κB aktivasyonu üzerindeki etkileri . ALBE (100 ug / ml), ConA (3 ug / ml) içeren veya içermeyen splenositlere 15 dakika süreyle işleme tabi tutuldu. Sitosolik ve nükleer fraksiyonun izolasyonundan sonra, NF-KB'nin translokasyonu (p65) sırasıyla yöntemlerde açıklanan Western blot ile değerlendirildi. ## P <0.01: tedavi edilmeyen gruptan önemli ölçüde farklı. ** P <0.01: tek başına ConA grubundan önemli ölçüde farklı.


            Ayrı bir pencerede aç
            Şekil 6
            ALBE'nin ConA ile indüklenen birincil murin splenositlerinde p38 MAPK fosforilasyonları üzerindeki etkileri . ALBE (100 ug / ml), ConA (3 ug / ml) içeren veya içermeyen splenositlere 15 dakika süreyle işleme tabi tutuldu. P38, JNK ve ERK gibi p38 MAP kinazın fosforilasyonları, yöntemlerde açıklanan Western blot ile değerlendirildi. # P <0.05, ## P <0.01: tedavi edilmeyen gruptan önemli ölçüde farklı. ** P <0.01: tek başına ConA grubundan önemli ölçüde farklı.

            Şuraya gidin: Tartışma


            Doğal ürünlerden izole edilen geleneksel ilaçlar, alerji ve atopik iltihaplanma gibi çeşitli bağışıklık bozukluklarının önlenmesi ve iyileştirilmesinde genellikle olumlu etkilere sahiptir. Bu çalışmada, Arctium lappa L' nin butanol fraksiyonu . mast hücrelerinde β-heksosaminidaz salınımını ve ConA ile uyarılan T hücrelerinde IL-4 ve IL-5 salgılanmasını azaltarak potansiyel anti-alerjik ve anti-enflamatuar etkiler göstermiştir. Mast hücreleri, alerjik veya ani aşırı duyarlılık yanıtlarında yer alan birincil efektör hücrelerdir [ 15]. IgE-FcyRI komplekslerinin, IgE ve FcyRI'nin mast hücrelerinde toplanması yoluyla antijen çapraz bağlanması, mast hücresi degranülasyonunun bir belirteci olan β-heksosaminidazın salınmasına neden olur. Β-heksosaminidaz ve histaminlerin salınması ayrıca, diğer atopik enflamatuar mediyatörlerin müteakip indüksiyonu yoluyla enflamatuar immün yanıtları güçlendirebilen IL-4, IL-6 ve TNF-α gibi proinflamatuar sitokinlerin üretimine de neden olur. Bu nedenle, bu süreçte sitokinlerin modülasyonu, alerjik yanıtların erken aşamasını düzenlemek için rasyonel bir yaklaşım olarak kabul edilir [ 5 , 15 ].

            Atopik dermatit, alerjik deri iltihabı ile karakterizedir. Atopik deride patolojik değişiklikler epidermal kalınlaşma ve inflamatuar hücrelerin belirgin infiltrasyonu olarak gözlenir [ 16 ]. Atopik dermatit, Th2 fenotipi ve IL-4, IL-5 ve IL-13 sekresyonunun baskınlığı ile ilişkilendirilmiştir [ 17 , 18]. ALBE'nin T hücresi immünomodülatör profilini karakterize etmek için, Th2 lenfosit fonksiyonunun bir belirteci olarak kullanılan splenositlerin ConA ile indüklenen proliferasyon ve sitokin (IL-4 ve IL-5) sekresyonu üzerindeki inhibitör etkilerini inceledik. ALBE, birincil murin splenositlerinde ConA ile indüklenen proliferasyonu ve sitokin (IL-4 ve IL-5) sekresyonu üzerindeki inhibitör etkileri arttırdı. ALBE, IL-4 ve IL-5 salınımını azaltarak alerjik ilişkili Th2 fonksiyonunu baskıladı. Bununla birlikte, toplam T hücresi alt kümelerinin (Th1 / Th2) sayısını artırarak, bağışıklık sistemini baskılamadan alerjik ilişkili Th2 hücre işlevini bir şekilde azaltabileceğini, çünkü tüm T hücresi alt kümelerini artırabileceğini gösterir.

            IL-4, endotel hücrelerinin eozinofil kemotaktik faktör ve eotaksin üretmesini sağlayan bir eozinofil kemoatraktan görevi görür [ 19 ]. IL-4 ayrıca IgE üretiminde [ 20 ] ve saf T hücrelerinden alerjik Th2 hücrelerine geçişte [ 21 ] önemlidir . NC / Nga atopik model farelerde cilt lezyonlarının immünohistokimyasal bir incelemesi, T hücrelerinin, mast hücrelerinin artmış infiltrasyonu ve IL-4 ve IL-5'in önemli ekspresyonu gibi atopik dermatitli hastalarda gözlenen etkilenen cildin tipik özelliklerini ortaya çıkardı. [ 22 , 23]. ALBE'nin ConA ile indüklenen Th2 hücreleri tarafından salınan IL-4 ve IL-5'in salgılanmasını azaltabilmesi, alerjik ve atopik inflamasyonda yararlı bir etkiye sahip olabileceğini gösterir. Daha sonra, NF-κB aktivasyonu ve MAPK'lerin fosforilasyonu dahil olmak üzere ALBE'nin sitokin sekresyonu üzerindeki ilgili mekanizmalarını değerlendirdik. NF-κB, enflamatuar sitokin üretimi gerektiren bağışıklık ve enflamatuar yanıtlarda yer alan genlerin ekspresyonunu düzenleyen anahtar bir transkripsiyon faktörüdür. NF-κB translokasyonu ve MAPKs yolu, doğuştan gelen ve edinilmiş immün yanıtların ve kronik inflamasyonun düzenlenmesinde önemli süreçler olarak kabul edilir [ 24 , 25 ]. NF-κB ayrıca Th2 hücre farklılaşmasını ve Th2'ye bağlı hava yolu inflamasyonunu düzenleyen kritik bir transkripsiyon faktörüdür [26 ].

            ALBE'nin NF-κB'nin ConA ile indüklenen nükleer translokasyonu üzerindeki inhibitör etkilerini saptadık (p65). Alerjik bir hastalık olan astımda artmış NF-κB aktivitesi bildirilmiştir ve NF-κB aktivitesinin inhibisyonu astımı azaltmıştır [ 25]. Bu nedenle, ALBE'nin neden olduğu aktive NF-B'deki azalmaya bağlı olarak anti-alerjik bir etkiye sahip olabileceğini düşünmekteyiz. Geleneksel MAP kinazlar üç aileye sınıflandırılır: c-Jun N-terminal kinazlar (JNK'ler), p38 MAP kinazlar ve hücre dışı sinyalle düzenlenen kinazlar (ERK'ler). P38 MAPK'nın fosforilasyonu dahil hücre içi sinyal transdüksiyonunu takiben NF-κB translokasyonu takip eder ve bu da sitokinlerin ve kemokinlerin üretimine yol açar. Ayrıca ALBE'nin, birincil sıçangil splenositlerinde p38 MAPK'nın ConA ile aktive edilmiş fosforilasyonunu önemli ölçüde bastırdığını da gösterdik. P38 MAPK aktivasyonunun, alerjik hastalıkta antijen maruziyetine yanıt olarak insan T hücrelerinde IL-4, IL-5 ve IL-13 ekspresyonu ile sonuçlanan transkripsiyon faktörlerini aktive edebileceği bildirilmiştir [ 25]. ALBE'nin ConA ile aktive edilmiş MAPK'ları ve IL-4 ve IL-5'in mRNA ekspresyonunu azalttığı gerçeği, ALBE'nin anti-alerjik ve anti-enflamatuar etkilere sahip olma olasılığını desteklemektedir.

            Sonuçlar
            ALBE, NF-B'nin transkripsiyonunu ve splenositlerdeki aktive MAPK sinyal yolunu baskılayarak anti-alerjik ve anti-enflamatuar aktiviteler uygulayabilir. Ek olarak, ALBE, azalan p-heksosaminidaz salınımı ile belirlendiği üzere, mast hücrelerinin antijen kaynaklı degranülasyonunu inhibe etti. Bu sonuçlardan, ALBE'nin atopik dermatit dahil olmak üzere çeşitli alerjik enflamasyon formlarını tedavi etmek için terapötik bir ajan olarak faydalı olabileceğini öne sürüyoruz.

            Çıkar çatışması
            Yazarlar, rakip çıkarları olmadığını beyan ediyorlar.

            Yazar katkıları
            EHS moleküler genetik çalışmaları gerçekleştirdi ve taslağı hazırladı. SAJ, SP, bağışıklık tahlillerini ve western lekelemeyi gerçekleştirdi. HJ, RT-PCR ve XTT testini gerçekleştirdi. SCK, çalışmanın tasarımına katılmış ve istatistiksel analizi gerçekleştirmiştir. CHL ve SYK çalışmayı tasarladı ve tasarımına ve koordinasyonuna katıldı ve yazının hazırlanmasına yardımcı oldu. Tüm yazarlar son metni okudu ve onayladı.

            Teşekkürler
            Bu çalışma, Kore Cumhuriyeti Gıda, Tarım, Ormancılık ve Balıkçılık Bakanlığı, Tarım ve Ormancılık için Teknoloji Geliştirme Programı tarafından desteklenmiştir.

            Referanslar
            • Akdis CA, Akdis M, Trautmann A, Blaser K. Atopik dermatitte immün düzenleme. Curr Opin Immunol. 2000; 12 : 641–6. doi: 10.1016 / S0952-7915 (00) 00156-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Leung DY, Bieber T. Atopik dermatit. Lancet. 2003; 361 : 151–60. doi: 10.1016 / S0140-6736 (03) 12193-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Guo YC, Li ZX, Lin H.Mast hücre degranülasyonu sürecinde histamin, triptaz ve beta-heksosaminidaz arasındaki ilişkinin araştırılması. Xi Bao Yu Fen Zi Mian Yi Xue Za Zhi. 2009; 25 : 1073–5. [ PubMed ] [ Google Akademik ]
            • Kilise MK, Levi-Schaffer F. İnsan mast hücresi. J Allergy Clin Immunol. 1997; 99 : 155–60. doi: 10.1016 / S0091-6749 (97) 70089-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Gilfillan AM, Tkaczyk C. Mast-hücre aktivasyonu için entegre sinyal yolakları. Nat Rev Immunol. 2006; 6 : 218–30. doi: 10.1038 / nri1782. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Homey B, Steinhoff M, Ruzicka T, Leung DY. Sitokinler ve kemokinler atopik deri iltihabını düzenler. J Allergy Clin Immunol. 2006; 118 : 178–89. doi: 10.1016 / j.jaci.2006.03.047. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Georas SN, Guo J, De Fanis U, Casolaro V. Alerjik hastalıkta T-yardımcı hücre tipi-2 regülasyonu. Eur Respir J. 2005; 26 : 1119–37. doi: 10.1183 / 09031936.05.00006005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Park SY, Hong SS, Han X, Hwang JS, Lee D, Ro JS, Hwang BY. Den Lignanları Arctium Lappa ve LPS ile uyarılmış nitrik oksit üretiminin inhibe etmeleri. Chem Pharm Bull. 2007; 55 : 150–2. doi: 10.1248 / cpb.55.150. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Lin CC, Lu JM, Yang JJ, Chuang SC, Ujiie T. Arctium lappa'nın anti-enflamatuar ve radikal temizleme etkileri. Ben J Chin Med. 1996; 24 : 127–37. doi: 10.1142 / S0192415X96000177. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chen FA, Wu AB, Chen CY. Farklı tedavinin dulavratotu serbest radikal temizleme aktivitesi ve aktif bileşenlerinin varyasyonları üzerindeki etkisi. Food Chem. 2004; 86 : 479–84. doi: 10.1016 / j.foodchem.2003.09.020. [ CrossRef ] [ Google Akademik ]
            • Maruta Y, Kawabata J, Niki R. Dulavratotu ( Arctium lappa L. ) köklerinde antioksidan kafeoilkinik asit türevleri J Agric Food Chem. 1995; 43 : 2592–5. doi: 10.1021 / jf00058a007. [ CrossRef ] [ Google Akademik ]
            • Fuchigami M, Kishigami Y, Sasaki A. Yenilebilir dulavratotu kökündeki pektik polisakkaritler. Journal of Home Economics Japan. 1990; 41 : 947–62. [ Google Scholar ]
            • Morita KY, Nishijima Y, Kada T. Dulavratotu ( Arctium lappa Linne ) Agric Biol Chem. 1985; 49 : 925–32. [ Google Scholar ]
            • Lin SC, Lin CH, Lin CC, Lin YH, Chen CF, Chen IC, Wang LY. Arctium lappa Linne'nin kronik etanol tüketimiyle indüklenen ve karbon tetraklorür tetraklorür ile güçlendirilen karaciğer yaralanmaları üzerindeki hepatoprotektif etkileri . J Biomed Sci. 2002; 9 : 401–9. [ PubMed ] [ Google Akademik ]
            • Theoharides TC, Kalogeromitros D. Mast hücrelerinin alerji ve inflamasyondaki kritik rolü Ann NY Acad Sci. 2006; 1088 : 78–99. doi: 10.1196 / annals.1366.025. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Soter NA. Atopik egzamanın morfolojisi. Alerji. 1989; 44 (Ek 9): 16–9. [ PubMed ] [ Google Akademik ]
            • Grewe M, Walther S, Gyufko K, Çekçe W, Schöpf E, Krutmann. Atopik dermatit hastalarının inhalant alerjen yama testi reaksiyonlarında yerinde ifade edilen sitokin modelinin analizi. J Invest Dermatol. 1995; 105 : 407–10. doi: 10.1111 / 1523-1747.ep12321078. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Grewe M, Bruijnzeel-Koomen CA, Schöpf E, Thepen T, Langeveld-Wildschut AG, Ruzicka T. Atopik dermatitin immünopatogenezinde Th1 ve Th2 hücrelerinin rolü. Immunol Today. 1998; 19 : 359–61. doi: 10.1016 / S0167-5699 (98) 01285-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Rothenberg ME, Luster AD, Leder P. Murine eksotoksin: endotel hücrelerinde ve interlökin 4 ile indüklenen tümör baskılamasında indüklenebilen bir eozinofil kemoatraktan. Proc Natl Acad Sci ABD. 1995; 92 : 8960–4. doi: 10.1073 / pnas.92.19.8960. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kuhn R, Rajewsky K, Muller W. İnterlökin-4 eksikliği olan farelerin üretimi ve analizi. Bilim. 1991; 254 : 707–10. doi: 10.1126 / science.1948049. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Hines C. Mast hücre medyatörlerinin çeşitli etkileri. Clin Rev Allergy Immunol. 2002; 22 : 149–60. doi: 10.1385 / CRIAI: 22: 2: 149. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Huels C, Germann T, Goedert S, Hoehn P, Koelsch S, Hültner L, Palm N, Rüde E, Schmitt E. Naif CD4 + T hücrelerinin ve kemik iliğinden türetilmiş mast hücrelerinin birlikte aktivasyonu Th2 hücrelerinin gelişmesine neden olur. Int Immunol. 1995; 7 : 525–32. doi: 10.1093 / intimm / 7.4.525. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Matsuda H, Watanabe N, Geba GP, Sperl J, Tsudzuki M, Hiroi J, Matsumoto M, Ushio H, Saito S, Askenase PW, Ra C. Int Immunol. 1997; 9 : 461–6. doi: 10.1093 / intimm / 9.3.461. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Karin M, Lin A. NF-κB yaşam ve ölümün dönüm noktasında. Nat Immunol. 2002; 3 : 221–7. doi: 10.1038 / ni0302-221. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Barnes PJ. Alerjik hastalıklarda GATA-3'ün rolü. Curr Mol Med. 2008; 8 : 330–4. doi: 10.2174 / 156652408785160952. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Yang L, Cohn L, Zhang DH, Homer R, Ray A, Ray P. Alerjik hava yolu inflamasyonunda eozinofili indüksiyonunda nükleer faktör B'nin temel rolü. J Exp Med. 1998; 188 : 1739–50. doi: 10.1084 / jem.188.9.1739. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

            Yorum yap


            • #7
              Dulavratotu ( Arctium lappa L. ) morin ve quercetin 3-O-rhamnoside bakımından zengin yaprak flavonoidleri, RAW264.7 hücrelerinde lipopolisakarit kaynaklı inflamasyonu ve oksidatif stresi iyileştirir

              Jue Cui , 1 , 2 Wenyi Zong , 1 Nannan Zhao , 1 , 2 ve Rui Yuan 1
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              1 Gıda ve Biyoloji Mühendisliği Okulu, Xuzhou Teknoloji Üniversitesi, Xuzhou Çin
              2 Jiangsu Gıda Kaynağı Geliştirme ve Güvenli Kalite Laboratuvarı, Xuzhou Teknoloji Enstitüsü, Xuzhou Çin
              Jue Cui, E-posta: moc.liamtoh@0891eujiuc .
              Sorumlu yazar.
              * Yazışma
              Jue Cui, Gıda ve Biyoloji Mühendisliği Okulu, Xuzhou Teknoloji Üniversitesi, 221000 Xuzhou, Çin.
              E-posta: moc.liamtoh@0891eujiuc

              ilişkili Veriler
              Veri Kullanılabilirliği Bildirimi
              Git: Soyut
              Bu çalışmada, RAW264.7 makrofaj hücrelerinde LPS ile uyarılan iltihaplanma üzerindeki dulavratotu yaprağı flavonoidlerinin (BLF) anti-enflamatuar ve antioksidan aktiviteleri ve mekanizması araştırıldı. BLF ve ana etkili bileşenler morin ve quercetin 3-O-rhamnoside ön işleminin NO, PGE2, TNF-α ve IL-6 üretimini düşürerek RAW264.7 hücrelerinin LPS ile uyarılan inflamatuar aktivasyonunu önemli ölçüde inhibe ettiğini gözlemledik ( p < .05). Aynı zamanda, BLF yalnızca in vitro güçlü serbest radikal süpürme kabiliyetine sahip olmakla kalmadı (DPPH: 2025,33 ± 84,15 μmol Trolox/g, ABTS: 159,14 ± 5,28 μmol Trolox/g ve ORAC: 248,72 ± 9,74 μmol Trolox/g), aynı zamanda antioksidan enzimlerin (SOD, CAT ve GSH-Px) azalan aktivitesini eski haline getirerek ve LPS ile uyarılan makrofajlarda yüksek ROS ve TBARS seviyelerini azaltarak hücresel oksidatif stres durumunu etkili bir şekilde iyileştirdi ( p < .05). Western blot analizi, BLF ve ana bileşenler morin ve quercetin 3-O-rhamnoside'nin, iNOS ve COX-2 protein ekspresyonunu azaltarak, hücresel ROS'u azaltarak ve NF-κB sinyal yolunun aktivasyonunu bloke ederek LPS ile uyarılan enflamasyonu esas olarak inhibe ettiğini gösterdi. makrofajlar. Sonuçlarımız topluca, BLF'nin antioksidan ve antiinflamatuar gıdaların geliştirilmesi için yeni bir fonksiyonel faktör türü olarak kullanılabileceğini ima etmektedir.

              Anahtar Kelimeler: antiinflamatuar, antioksidan, dulavratotu yaprağı flavonoidleri, morin, quercetin 3-O-rhamnoside
              Git: Soyut
              Bu çalışmada, dulavratotu yaprağı flavonoid tedavisinin, antioksidan enzimlerin aktivitesini eski haline getirerek, hücre içi ROS içeriğini azaltarak ve NF-κB sinyal yolu aktivasyonunu bloke ederek, RAW264.7 hücrelerinde LPS ile uyarılan oksidatif stresi ve inflamatuar yanıtı önemli ölçüde azaltabildiğini kanıtladık. Q3R ve morin, dulavratotu yaprağı flavonoidlerinin en önemli antioksidan ve antiinflamatuar faktörleridir. Bu çalışma, BLF'nin doğal ve etkili bir antioksidan ve antiinflamatuar gıda katkı maddesi olarak geliştirilmesi için teorik bir temel sunmaktadır.


              Git: 1. GİRİŞ
              Doğal bir biyolojik tepki olan enflamasyon, patojenler, kimyasal ajanlar ve otoimmün tepkiler gibi çoklu uyaranlar tarafından aktive edilebilir (Fujiwara & Kobayashi, 2005 ). Normalde, inflamatuar yanıt, antiinflamatuar ve proinflamatuar sitokinler arasında bir denge sağlar. Bununla birlikte, artan sayıda araştırma, yüksek yağlı ve yüksek şekerli diyetler dahil olmak üzere modern beslenme modellerinin sistemik inflamasyonu tetikleyebileceğini bulmuştur (Jamar ve ark., 2020 ) . Proinflamatuar mediatörlerin aşırı üretiminin, kanserler (Mantovani ve diğerleri, 2008 ), metabolik sendromlar (Hotamışlıgil, 2006 ) gibi kronik inflamatuarla ilişkili hastalıkların ilerlemesinde hayati bir rol oynadığı kanıtlanmıştır. ), ateroskleroz, dermatit, astım ve inflamatuar bağırsak hastalıkları (Wan ve diğerleri, 2019 ). Bu nedenle inflamasyonu kontrol etmek, bu tür hastalıkları önlemenin önemli bir yoludur.

              Önemli kanıtlar, makrofajların vücuttaki yüksek şekerli diyet ve yüksek yağlı diyetle indüklenen düşük dereceli inflamasyonda merkezi bir rol oynadığını göstermiştir (Jamar ve ark., 2020 ) . Bir dizi çalışma, yüksek yağlı bir diyetin tüketilmesi üzerine makrofajların aktive edildiğini doğrulamıştır. Aktive edildikten sonra makrofaj, adipositlerde insülin direncinin önemli bir nedeni olan inflamatuar yanıtı tetikler (Kawanishi ve diğerleri, 2010 ; Lumeng ve diğerleri, 2007 ). Çalışmalar, makrofaj aktivasyonundaki azalmanın diyete bağlı insülin direncini etkili bir şekilde iyileştirebileceğini bulmuştur (Xiong ve diğerleri, 2018 ; Ye ve diğerleri, 2016)). Son araştırmalar, birçok antioksidanın, makrofajların aktivasyonunu engelleyerek vücudun enflamatuar durumunu etkili bir şekilde iyileştirebildiğini bulmuştur (Reshmitha & Nisha, 2021 ; Zhang ve diğerleri, 2016 ). Yukarıdaki araştırma sonuçlarına dayanarak, gıdalara eklenen fonksiyonel bir faktör olarak yeni bir anti-inflamatuar efektörün diyete bağlı kronik enflamasyonu iyileştirmek için büyük talep olduğunu varsayıyoruz.

              Dulavratotu (Arctium lappa L.), bir tür geleneksel Çin şifalı bitkisi ve yenilebilir bir bitkidir. Dulavratotu tohumları ve kökleri genellikle artralji ve boğaz enfeksiyonları dahil olmak üzere iltihaplanma ile ilgili hastalıkları tedavi etmek için kullanılır. Anti-inflamatuar aktivite, flavonoidlerin yüksek düzeyde serbest radikal yakalama yeteneğine sahip olan yüksek anti-inflamatuar ve antioksidan özelliklere sahip olmasından kaynaklanıyor olabilir (Chen ve diğerleri, 2019; Lin ve diğerleri, 2021 ). Bununla birlikte, dulavratotu yaprakları genellikle dulavratotu hasadından sonra işe yaramaz bir yan ürün olarak atılır. Önceki çalışmamızda, dulavratotu yapraklarının birçok faydalı biyolojik aktiviteye sahip çok sayıda flavonoid içerdiğini bulmuştuk (Cui ve ark., 2021).). Dulavratotu yaprakları antioksidan ve antibakteriyel aktivitelere sahip olmasına rağmen, antiinflamatuar aktiviteleri hakkında çok az şey bilinmektedir. Dulavratotu yapraklarının kullanım değerini geliştirmek için dulavratotu yapraklarının anti-enflamatuar aktivitesini incelemek gerekir. Bu nedenle, mevcut araştırmanın amacı, antiinflamatuar ve antioksidan aktivitelere sahip doğal bir gıda fonksiyonel faktörünün kullanılmasına veri yardımı sağlamaktır. Bu çalışmanın bulguları, dulavratotu yaprağı flavonoidlerinin sağlıklı gıdalarda veya fonksiyonel gıdalarda takviye olarak kullanılması açısından değerlidir.

              Git: 2. MATERYAL VE YÖNTEMLER

              2.1. Malzemeler ve reaktifler
              DPPH, ABTS, Trolox, floresein sodyum tuzu ve lipopolisakkaritler (LPS, Escherichia coli O111:B4'ten) Sigma-Aldrich'ten satın alındı. Morin, quercetin 3-O-rhamnoside, kaempferol, apigenin 7-O-glucoside ve apigenin 7-O-rutinoside Shanghai Yuanye Biotechnology Co., Ltd.'den satın alındı. TNF-α ve IL-6 ELISA kitleri Pekin'den satın alındı Solarbio Technology Co., Ltd.. NIO tespit kiti, Beyotime Biotechnology Co., Ltd.'den satın alınmıştır. β-aktin, p65, p-p65, IκB, p-IκB, iNOS, COX-2 ve HO- için antikorlar 1 adet Proteintech tarafından sağlandı.

              2.2. Ekstraksiyon ve saflaştırma
              Dulavratotu yaprağı flavonoidlerinin ekstraksiyonu, saflaştırılması ve kompozisyon karakterizasyonu önceki araştırmamıza göre yapılmıştır (Cui ve diğerleri, 2021) .). Kısaca, dulavratotu yaprağı tozu, oda sıcaklığında 40 dakika boyunca bir ultrasonik banyoda (40 kHz, 200 W) %60 etanol ile ekstrakte edildi. BLF'nin konsantre ekstraktı, makrogözenekli bir reçine AB-8 kolonu ile saflaştırıldı ve ekstraktın %70 etanol eluatı toplandı, konsantre edildi, liyofilize edildi ve kompozisyon analizi ve aktivite değerlendirmesi için kullanıldı. BLF'nin flavonoid bileşimleri, bir UPLC-QTOF sistemi kullanılarak tespit edildi. Ana bileşenler, mevcut kütle verileri ve alıkonma süresi karşılaştırılarak karakterize edildi ve tepe alanı, her bir bileşiğin nispi içeriğini hesaplamak için kullanıldı. BLF'de yedi ana flavonoid tanımlanmıştır; apigenin 7-O-apiosyl-glucoside (%10.23), apigenin 7-O-glucoside (%8.27), apigenin 7-O-rutinoside (%14.89), morin (%16.77), kaempferol (%9,13), kaempferol 3,7-O-diglucoside (%5,50),

              2.3. BLF'nin toplam flavonoid içeriği
              Ham BLF'nin ve saflaştırılmış BLF'nin toplam flavonoid içeriği, birkaç modifikasyonla önceki bir yönteme göre belirlendi (Bajalan ve diğerleri, 2016 ). 2.7 ml numune solüsyonu ve 0.15 ml sodyum nitrit solüsyonu (%5, w/v) harmanlandı ve reaksiyon karışımı, karanlıkta 6 dakika 37°C'de kültürlendi. İnkübasyonun ardından reaksiyon sistemi, 0.15 ml alüminyum nitrat solüsyonu (%10, w/v) eklendikten sonra 6 dakika inkübe edildi. Daha sonra karıştırılan solüsyona 2 ml sodyum hidroksit (1 mol/L) ilave edildi ve 10 dakika inkübe edildi. Son olarak, reaksiyon solüsyonunun absorbansı 510 nm'de tespit edildi ve numunelerin flavonoid içeriği, bir rutin kalibrasyon eğrisi kullanılarak dondurularak kurutulmuş BLF numunesinin gramı başına mg rutin eşdeğeri (RE) olarak gösterildi.

              2.4. DPPH ve ABTS serbest radikalleri temizleme deneyi
              BLF'nin DPPH ve ABTS serbest radikali üzerindeki süpürme aktiviteleri, önceki yönteme göre incelenmiştir (Bajalan ve diğerleri, 2016 ; Tyagi ve diğerleri, 2021 ). Pozitif kontrol için Trolox kullanıldı ve serbest radikal yakalama analizinin sonuçları numuneye göre Trolox eşdeğeri (μmol Trolox/g) olarak gösterildi.

              2.5. Oksijen radikal absorbans kapasitesi testi
              Oksijen radikal absorbans kapasitesi (ORAC) testi, bazı modifikasyonlarla önceki bir yönteme göre incelenmiştir (Rodriguez-Bonilla ve diğerleri, 2017 ). Kısaca, farklı konsantrasyonlar için 20 µl numune solüsyonu, 20 µl sodyum floresein solüsyonu (63 nmol/L) ve 20 µl PBS tamponu (0,075 mol/L, pH 7,4) karıştırıldı ve 96 oyuklu bir mikroplakaya eklendi . Karışık solüsyonlar 37°C'de inkübe edildi. 15 dakika inkübasyonun ardından reaksiyon sistemine 140 µl AAPH solüsyonu (20 mmol/L) eklendi. Reaksiyon sisteminin floresan değerleri, tüm floresans değerleri sönene kadar her 2 dakikada bir tespit edildi. Trolox pozitif kontrol olarak kullanılarak numunelerin ORAC değeri, numuneye göre Trolox eşdeğeri (μmol Trolox/g) olarak gösterildi.

              2.6. Hücre kültürü ve sitotoksisite deneyi
              Murin makrofaj hücresi RAW264.7, Çin Bilimler Akademisi'nin (Şangay, Çin) Hücre Bankasından satın alındı ​​ve %5 CO içinde 37°C'de %10 FBS ve streptomisin/penisilin (100 U/ml) eklenmiş DMEM'de kültürlendi. 2 kuluçka makinesi. RAW264.7 hücreleri (1 x 10⁵ hücre /oyuk), 37°C'de farklı konsantrasyonlarda numunelerle inkübe edildi. 20 saat kültürlendikten sonra kültür çözeltisine CCK-8 çözeltisi (Beyotime) eklendi ve RAW264.7 hücreleri 4 saat daha kültürlendi. Son olarak, hücre kültürü ortamının absorbansı 450 nm'de okundu.

              2.7. Nitrik oksit tayini
              Hücre süpernatanının nitrik oksit (NO) konsantrasyonları, daha önce açıklandığı gibi Griess yöntemi kullanılarak tespit edildi (Qu ve diğerleri, 2018 ). RAW264.7 hücreleri , 24 saat boyunca hücre kültürlü bir plakada (1 x 10⁵ hücre /oyuk) yetiştirildi. 12 saat kültürlendikten sonra, hücreler 2 saat boyunca farklı konsantrasyonlarda BLF ile ön işleme tabi tutuldu ve hücreler sırasıyla 37°C'de 24 saat boyunca LPS (1 ug/ml) ile aktive edildi. Pozitif kontrol olarak deksametazon (1 umol/L) kullanıldı. 24 saat inkübasyondan sonra NO düzeylerini belirlemek için 100 µl hücre süpernatantı ve 100 µl Griess reaktifi karıştırıldı ve karışımın absorbansı 540 nm'de saptandı. Nitrit konsantrasyonu, standart eğrinin regresyon denklemine göre hesaplandı.

              2.8. Oksidatif stres durumunun belirlenmesi
              RAW264.7 hücreleri, altı oyuklu bir plakada kültürlendi ve farklı konsantrasyonlarda BLF (12.5 ve 25 μg/ml), morin (5 ve 20 μmol/L) ve quercetin 3-O-ramnosid (5 ve 20) ile ön işleme tabi tutuldu. μmol/L) sırasıyla 2 saat boyunca. Hücreler, 24 saat boyunca LPS (1 ug/ml) ile aktive edildi. 24 saat kültürlendikten sonra, süperoksit dismutaz (SOD), katalaz (CAT) ve glutatyon peroksidazın (GSH-Px) aktiviteleri, üreticinin talimatlarına (Nanjing Jiancheng) uygun olarak sırasıyla test kitleri kullanılarak ölçüldü. Enzim aktiviteleri birim/mg protein olarak gösterildi. Hücrelerdeki lipid oksidasyon seviyesini değerlendirmek için, hücrelerin tiyobarbitürik asitle reaksiyona giren maddesi (TBARS), üreticinin talimatlarına (Elabscience) uygun tahlil kitleri kullanılarak ölçüldü.

              2.9. Hücre içi ROS seviyeleri testi
              RAW264.7 hücreleri için hücre içi ROS seviyeleri, DCFH-DA boyaması kullanılarak ölçüldü. Ön muameleden sonra, hücreler 20 dakika DCFH-DA ile inkübe edildi ve iki kez PBS ile yıkandı. Hücrelerin floresan değeri, bir floresan spektrofotometresi (Synergy HT, Bio-Tek) kullanılarak ölçüldü.

              2.10. Enflamatuar sitokinler ve PGE2 üretimi tayini
              Hücreler için süpernatanın IL-6, TNF-α ve PGE2 seviyeleri, üreticinin talimatlarına göre sırasıyla ELISA kitleri (Solarbio) kullanılarak ölçüldü.

              2.11. Western blot analizi
              Tedaviden sonra hücreler, fosfataz ve proteaz inhibitörleri ile karıştırılmış RIPA solüsyonu ile parçalandı. Santrifüjlemeden sonra süpernatan, Bradford yöntemi kullanılarak ölçüldü. Hücrelerin proteini %10 SDS-PAGE ile ayrıldı ve NC membranına aktarıldı. NC membranı, 2 saat boyunca yağsız süt kullanılarak bloke edildi ve β-aktin, COX-2, iNOS, HO-1, p-IκB, IκB, NF-κB p65 ve NF-κB dahil olmak üzere bir birincil antikor (Proteintech) ile inkübe edildi. gece boyunca 4°C'de p-p65. İnkübasyondan sonra membran TBST ile yıkandı ve sekonder antikor (Proteintech) ile 2 saat inkübe edildi. Protein bantları, bir ECL kiti (Millipore) kullanılarak incelendi ve bantların görüntüsü, bir ChemiDoc görüntüleme sistemi ile yakalandı ve yükleme kontrolü olarak β-aktin ile ImageJ yazılımı (Ulusal Sağlık Enstitüleri) kullanılarak dansitometri ile ölçüldü.

              2.12. istatistiksel analiz
              Bu çalışmadaki tüm deneyler en az üç kez tekrarlandı ve sonuçlar ortalama ± standart sapma ( SD ) olarak ifade edildi. Farklılıkların istatistiksel önemini değerlendirmek için tek yönlü varyans analizi (ANOVA) ve Tukey post-hoc testleri GraphPad Prism V.8.0 (GraphPad Software Inc.) ile yapıldı.

              Git: 3. SONUÇLAR VE TARTIŞMA

              3.1. BLF'nin flavonoid içeriği ve in vitro antioksidan aktiviteleri
              BLF'nin antioksidan aktivitesini değerlendirmek için, ilk olarak, ham BLF ve saflaştırılmış BLF'nin DPPH ve ABTS serbest radikali üzerindeki in vitro flavonoid içeriği ve süpürme kapasiteleri araştırıldı. Ham BLF ve saflaştırılmış BLF'nin flavonoid içeriği sırasıyla 73.28 ± 3.15 ve 239.94 ± 10.52 mg RE/g idi. Ham BLF ve saflaştırılmış BLF için DPPH ve ABTS radikalinin süpürme kapasiteleri Trolox eşdeğerleri olarak ifade edildi. DPPH testinin sonucu, saflaştırılmış BLF'nin (2025,33 ± 84,15 μmol Trolox/g) ham BLF'den (577,10 ± 23,62 μmol Trolox/g) daha yüksek süpürme aktivitesi gösterdiğini gösterdi. ABTS testinin sonucu, saflaştırılmış BLF'nin (159,14 ± 5,28 μmol Trolox/g) ham BLF'den (49,31 ± 2,36 μmol Trolox/g) daha yüksek aktiviteler sergilediğini gösterdi. Aynı şekilde ham BLF ve saflaştırılmış BLF'nin ORAC değerleri 73.26±3.27 ve 248.72±9 olarak değerlendirilmiştir. Sırasıyla 74 μmol Trolox/g. Serbest radikal süpürme aktivitesi ve flavonoid içeriğinin sonuçları, saflaştırılmış BLF'nin ham BLF'den daha güçlü antioksidan aktivite ve flavonoid içeriği gösterdiğini gösterdi; bu, flavonoid içeriğinin konsantrasyonları arttıkça in vitro antioksidan aktivitelerin arttığını ima etti (Tablo 1). TABLO 1


              BLF'nin in vitro toplam flavonoid içeriği ve antioksidan aktivitesi
              Ham BLF 72,38 ± 3,15 577,10 ± 23,62 49,31 ± 2,36 73,26 ± 3,27
              Saflaştırılmış BLF 239,94 ± 10,52 2025,33 ± 84,15 159,14 ± 5,28 248,72 ± 9,74
              Ayrı bir pencerede aç

              3.2. BLF, LPS ile aktive olan RAW264.7 hücrelerinin PGE2 ve NO üretimini azalttı
              Nitrik oksit, nitrik oksit sentaz tarafından üretilen kritik bir sinyal molekülüdür ve enflamatuarla ilişkili hastalıkların gelişiminde hayati bir rol oynadığı doğrulanmıştır (Xue ve diğerleri, 2020 ) . Bu nedenle, bu çalışmada, BLF'nin anti-enflamatuar aktiviteleri, LPS ile uyarılan RAW264.7 hücrelerinin NO üretimini saptayarak tahmin edildi. İlk olarak, BLF'nin sitotoksik etkisi, LPS ile aktive olan RAW264.7 hücreleri üzerindeki farklı konsantrasyonlarda değerlendirildi. 24 saat boyunca çeşitli konsantrasyonlarda tedaviyi takiben hücre canlılığının sonuçları Şekil'de gösterilmiştir. 1. Şekilde gösterildiği gibi 1 A, test edilen konsantrasyonda BLF ile muameleden sonra hücre canlılığında belirgin bir azalma gözlenmedi; bu, BLF'nin test edilen konsantrasyonda RAW264.7 hücreleri üzerinde hiçbir sitotoksik etkiye sahip olmadığını gösterir. BLF'nin NO salgı seviyeleri üzerindeki inhibe edici aktivitesini değerlendirmek için, hücre süpernatanındaki NO konsantrasyonları Griess deneyleri ile ölçüldü (Şekil 1b). BLF, LPS ile uyarılan makrofajların NO üretimini doza bağlı olarak baskılayabilir ( p < .01). BLF'nin etkili bileşenlerini aydınlatmak için, bileşik kompozisyon ve BLF'nin ana bileşenlerinin LPS ile uyarılan RAW264.7 hücrelerinin NO salgılama seviyeleri üzerindeki inhibe edici aktivitesi tahmin edildi. UPLC-QTOF'un sonuçları, BLF'deki ana bileşenlerin morin, birkaç apigenin glikozit, kuersetin glikozit, kaempferol ve glikozidini içerdiğini gösterdi. BLF'nin ana bileşenlerinin NO salgı seviyeleri üzerindeki inhibe edici aktivitesi, NO üretiminin 20 µmol/L'de kersetin 3-O-rhamnosid ve morin tarafından önemli ölçüde azaldığını gösterdi ( p < .01), apigenin glukozidlerinin inhibitör etkileri ise anlamlı değildi. Quercetin 3-O-rhamnoside (Q3R) ve morinin anti-inflamatuar etkilerini daha fazla doğrulamak için hücre kültürü ortamındaki NO ve PGE2 konsantrasyonları ölçüldü. Şekilde gösterildiği gibi 1 gün, e , test edilen konsantrasyonlarda morin, Q3R ve BLF ile hücrelerin ön tedavisi , LPS ile aktive olan RAW264.7 hücrelerinin NO ( p < .05) ve PGE2 ( p < .001) üretimini doza bağlı olarak inhibe etti; BLF'deki ana anti-inflamatuar bileşenler.

              ŞEKİL 1
              BLF ve ana bileşenleri, LPS ile aktive olan RAW264.7 hücrelerinin PGE2 ve NO üretimini azalttı. (a) BLF'nin RAW264.7 hücreleri üzerindeki sitotoksik etkisi. (b) BLF'nin LPS ile aktive olan RAW264.7 hücrelerinin NO üretimi üzerindeki inhibe edici etkisi. ** p < .01, *** p < .001, LPS ile işlenmiş hücrelere kıyasla. (c) BLF için ana bileşenlerin, LPS ile aktive olan RAW264.7 hücrelerinin NO üretimi üzerindeki inhibe edici etkisi. * p < .05, ** LPS ile işlenmiş hücrelere kıyasla p < .01. (d) Morin, quercetin 3-O-rhamnoside (Q3R) ve BLF'nin LPS ile aktive olan RAW264.7 hücrelerinin NO üretimi üzerindeki inhibe edici etkisi. ## p < .01, işlenmemiş hücrelerle karşılaştırıldığında. (e) LPS ile aktive olan RAW264.7 hücrelerinin PGE2 üretimi üzerinde morin, Q3R ve BLF'nin inhibe edici etkisi. ### işlenmemiş hücrelerle karşılaştırıldığında p < .001 3.3. BLF, LPS ile aktive olan RAW264.7 hücrelerinin ROS ve TBARS üretimini inhibe etti


              Birkaç çalışma, reaktif oksijen türlerinin (ROS) kronik inflamatuar hastalıkların patogenezi ile yakından ilişkili olduğunu doğrulamıştır (El-Kenawi & Ruffell, 2017 ). Şekilde gösterildiği gibi 2aROS üretiminin sonuçları, RAW264.7 hücrelerinin test edilen konsantrasyonlarda BLF, morin ve Q3R ile ön işleminin LPS ile uyarılan ROS aşırı üretimini önemli ölçüde engellediğini gösterdi ( p < .05). Serbest radikal saldırısından sonra doymamış yağ asitleri için lipid peroksidasyonunun ürünü olan TBARS, genellikle oksidatif stresin bir biyobelirteci olarak kullanılır (Tsikas, 2017 ). Bu çalışmada, hücrelerdeki lipid peroksidasyonunun boyutu TBARS ile analiz edildi ve TBARS sonuçları morin, Q3R veya BLF takviyesinin LPS ile uyarılan TBARS konsantrasyon artışını etkili bir şekilde baskıladığını gösterdi (Şekil 2b). Morin (5 µmol/L), Q3R (5 µmol/L) ve BLF (12.5 µg/ml) gruplarının TBARS içerikleri etkili bir şekilde sırasıyla 6.92, 7.23 ve 5.36 µmol/g prot'a düşmüştür. Yirmi µmol/L morin ve Q3R ve 25 µg/ml BLF ön tedavi grupları, TBARS oluşumunu sırasıyla 6.35, 6.41 ve 4.47 µmol/g prot'a kadar önemli ölçüde azalttı ( p < .05), bu da BLF'nin etkili bir şekilde elimine edebileceğini düşündürür LPS ile uyarılmış ROS üretimi ve hücrelerde lipid peroksidasyonu.

              ŞEKİL 2
              BLF, morin, quercetin 3-O-rhamnoside (Q3R), LPS ile Uyarılan RAW264.7 Hücrelerinin ROS ve TBARS üretimini inhibe etti. (a) RAW264.7 Hücrelerinin ROS içeriği (b) RAW264.7 Hücrelerinin TBARS içeriği. ## p < .01, işlenmemiş hücrelerle karşılaştırıldığında. * p < .05, ** LPS ile işlenmiş hücrelere kıyasla p < .01

              3.4. BLF, LPS ile aktive olan RAW264.7 hücrelerinde antioksidan enzimlerin aktivitesini iyileştirdi
              SOD, CAT ve GSH-Px, hücrelerde ROS temizliği için önemli enzimlerdir ve bu enzimler, LPS ile uyarılan ROS üretimini ortadan kaldırabilir ve oksidatif stresin neden olduğu hücre hasarını azaltabilir (Liu ve diğerleri, 2011 ) . Bu çalışmada LPS, SOD, CAT ve GSH-Px canlılıklarında bir düşüşe neden oldu. BLF, morin ve Q3R ön muamelesi, test edilen tüm enzimlerin aktivitelerini eski haline getirdi. Şekilde gösterildiği gibi 3a-c, kontrol gruplarında SOD, CAT ve GSH-Px vitaliteleri sırasıyla 102,5, 28,5 ve 106,3 U/mg olarak saptanırken, LPS gruplarında enzimatik aktiviteler sırasıyla 46,2, 14,4 ve 48,1 U/mg'a düştü. . BLF, morin ve Q3R ile ön muamele , sırasıyla LPS ile aktive edilmiş RAW 246.7 hücrelerinde test edilen tüm enzimlerin canlılıklarını önemli ölçüde geri kazandırdı ( p < .01). Yukarıdaki sonuçlar, aşırı ROS'un temizlenmesinin ve antioksidan enzimlerin aktivitesinin geri kazanılmasının, BLF'nin RAW246.7 hücrelerinde LPS tarafından indüklenen enflamatuar aktivasyonu inhibe etmesi için önemli yollar olabileceğini ima etti.

              FİGÜR 3
              BLF, morin ve Q3R, LPS ile aktive olan RAW264.7 hücrelerinde antioksidan enzimlerin aktivitesini geliştirdi. (a) RAW264.7 Hücrelerinin SOD aktivitesi (b) RAW264.7 Hücrelerinin CAT aktivitesi (c) RAW264.7 Hücrelerinin GSH-Px aktivitesi 3.5. BLF, LPS ile aktive olan RAW264.7 hücrelerinde enflamatuar sitokinlerin seviyesini azalttı


              Önceki araştırmalar, LPS stimülasyonunun IL-6, TNF-α ve diğer inflamatuar sitokinlerin oluşumunu destekleyebileceğini doğrulamıştır. Bu enflamatuar sitokinler, enflamasyonun başlamasında ve gelişmesinde çok önemli bir rol oynar (Lee ve diğerleri, 2017 ; Wellen & Hotamisligil, 2005 ; Xu ve diğerleri, 2020 ). Aktif makrofajlar tarafından salgılanan proinflamatuar bir sitokin olan TNF-α, bir dizi inflamatuar faktörün ekspresyonunu düzenlemek için NF-κB sinyal yolunu aktive edebilir (Cheon, 2017 ) . IL-6, aktive edilmiş makrofajlar tarafından üretilir ve düzensiz sürekli IL-6 üretimi, kronik inflamatuar yanıt ve otoimmünitede hayati bir rol oynar (Mohamad ve ark., 2018) .). BLF'nin RAW264.7 hücrelerinde enflamatuar sitokinlerin oluşumu üzerindeki etkisini değerlendirmek için TNF-α ve IL-6 konsantrasyonları ELISA ile tespit edildi. Şekilde gösterildiği gibi 4, BLF, morin ve Q3R, RAW264.7 makrofajlarının test edilen konsantrasyonlarda TNF-α ve IL-6 salmasını önemli ölçüde engelledi ( p < .01). LPS tedavi grubu ile karşılaştırıldığında, makrofajlar 20 µmol/L morin ile tedavi edildiğinde, TNF-α ve IL-6 konsantrasyonları sırasıyla 22.59 ve 2.37 ng/ml'ye önemli ölçüde düşmüştür. Benzer şekilde, Q3R, enflamatuar faktör salgılanmasının etkili bir şekilde engellendiğini göstermiştir. LPS grubuyla karşılaştırıldığında, makrofajlar 20 µmol/L Q3R ile tedavi edildiğinde, TNF-α ve IL-6 konsantrasyonları sırasıyla 26.70 ve 2.64 ng/ml olmak üzere önemli ölçüde azaldı. Benzer sonuçlar, morinin RAW264.7 hücrelerinde monosodyum ürat kristali ile uyarılan inflamatuar yanıtı önemli ölçüde ortadan kaldırdığını bulan kişiler tarafından da rapor edilmiştir (Dhanasekar ve diğerleri, 2015).). Benzer şekilde, çeşitli çalışmalar morinin antiinflamatuar aktivitelerini doğrulamıştır (Case lli ve diğerleri, 2016 ; Guerra ve diğerleri, 2006 ; Li ve diğerleri, 2016 , 2020 ; Tianzhu ve diğerleri, 2014 ; Wang ve diğerleri, 2016 ). Bu çalışmalar, morinin hem in vitro hem de in vivo aktif makrofajları inhibe ederek inflamasyona dahil olan çoğu efektörü inhibe eden etkili bir anti-inflamatuar ajan olduğunu göstermiştir. Yukarıdaki sonuçlara dayanarak, BLF'nin aktif makrofajlar için LPS kaynaklı TNF-α ve IL-6 oluşumunu önemli ölçüde baskılayabileceği önerilebilir ve morin ve Q3R, BLF'nin ana aktif bileşenleri olabilir.

              ŞEKİL 4
              BLF, morin ve Q3R, LPS ile aktive olan RAW264.7 hücrelerinde TNF-a ve IL-6 üretimini inhibe etti. (a) RAW264.7 Hücreleri için yüzer maddenin TNF-a konsantrasyonu. (b) RAW264.7 Hücreleri için süpernatan IL-6 konsantrasyonu 3.6. BLF, LPS tarafından indüklenen NF-κB sinyal yolunun aktivasyonunu inhibe etti


              PGE2 ve NO oluşumunda BLF kaynaklı azalmanın sonuçlarına dayanarak, COX-2 ve iNOS'un protein ekspresyon seviyelerini tespit ettik. COX-2 ve iNOS, NF-κB sinyal yolunun önemli aşağı akış faktörleri ve NO ve PGE2 üretiminin önemli enzimleridir (Liu ve diğerleri, 2017 ). Şekilde gösterildiği gibi 5a,b, BLF ile ön tedavi, LPS'nin neden olduğu COX-2 ( p < .001) ve iNOS proteini ( p < .01) artışını önemli ölçüde azalttı; COX-2 ve iNOS'un protein ekspresyon seviyelerini translasyon seviyelerinde aşağı doğru düzenler. Benzer şekilde, BLF'deki Q3R ve morin dahil olmak üzere iki anahtar aktif bileşen, COX-2 ve iNOS proteininin protein seviyelerini de düşürerek, morin ve Q3R'nin BLF'nin anti-enflamatuar aktivitesi için anahtar aktif bileşenler olabileceğini gösterir.


              ŞEKİL 5
              RAW264.7 hücrelerinin iNOS, COX-2 ve HO-1 protein ekspresyon seviyeleri. ( a ) RAW264.7 hücrelerinin protein bantları fotoğrafı. (b) RAW264.7 hücreleri için iNOS'un nispi protein ifadesi. (c) RAW264.7 hücreleri için COX-2'nin nispi protein ifadesi. (d) RAW264.7 hücreleri için HO-1'in nispi protein ifadesi. ## p < .01, ### p < .001, işlenmemiş hücrelerle karşılaştırıldığında. ** p < .01, *** p < .001, LPS ile işlenmiş hücrelerle karşılaştırıldığında

              Nükleer faktör (eritroid türevli 2)-benzeri 2 (Nrf2), önemli bir ökaryotik redoks-aktif efektördür ve HO-1, hücreleri ROS saldırısına karşı korumak için eksprese edilen Nrf2'nin önemli bir aşağı akış efektör proteinidir (Loboda et al. , 2016 ). Bu nedenle, RAW 264.7 hücrelerinde HO-1 protein seviyelerini saptayarak oksidatif stres durumunu değerlendirdik. Şekilde gösterildiği gibi 5c, LPS stimülasyonu, HO-1 proteininin ekspresyonunu önemli ölçüde arttırdı, bu, LPS stimülasyonunun hücre içi ROS seviyesini artırabileceğini ve oksidatif strese neden olabileceğini gösterir. BLF ile ön tedavi, LPS'nin neden olduğu HO-1 proteini artışını önemli ölçüde azalttı ( p < .001), bu, BLF'nin Nrf2-HO-1 sinyal yolunu uyararak koruyucu bir rol oynamadığını, ancak RAW264'te LPS'nin neden olduğu oksidatif stresi azalttığını gösterir. Gereksiz ROS'u ortadan kaldırarak .7 hücre.

              NF-κB, inflamatuar yanıtta iNOS, PGE2, TNF-α ve IL-6 gibi proinflamatuar sitokinlerin ve aracıların sentezini ve salımını kontrol eden önemli bir sinyal yoludur (Liu ve diğerleri, 2017) .). Normal koşullar altında, inflamatuar stimülasyonun yokluğunda, NF-κB, inhibitörü IκB ile bir kompleks oluşturmak için sitoplazmada dolaşarak inaktive edilir. Enflamasyon tarafından uyarıldığında, IκBa fosforile edilir ve bozulur, bu da NF-κB p65'in salınmasıyla sonuçlanır. NF-κB p65, çoklu enflamatuar genlerin promotör bağlanmasından ve transkripsiyonel regülasyonundan sorumlu önemli bir alt birimdir. IκBa fosforile edildiğinde ve bozunduğunda, p65 fosforile edilir ve çoklu proinflamatuar aracıların ve sitokinlerin transkripsiyonunu başlatmak için hücre çekirdeğine aktarılır. Bu nedenle, IκB-α ve p65'in fosforilasyonu, sitokinlerin ve enflamatuar mediatörlerin ekspresyonu için önemlidir. BLF'nin makrofaj aktivasyonunu inhibe eden mekanizmasını araştırmak için, IκBa, p-IκBa, p65 ve p-p65'in protein ekspresyon seviyeleri belirlendi. 6 , LPS stimülasyonu , RAW264.7 hücrelerinin p-IκBa/IκBa ( p < .001) ve p-p65/p65 ( p < .05) protein seviyelerini etkili bir şekilde yükseltti ; bu, LPS aktivasyonunun NF-κB sinyal yolunun aktivasyonunu etkili bir şekilde desteklediğini gösterir. . Eşzamanlı olarak, BLF ön tedavisi, p-IκBa/IκBa ve p-p65/p65'in ( p < .001) protein seviyelerini önemli ölçüde azalttı; bu, BLF'nin LPS ile aktive olan NF-κB'yi inhibe ederek gen ekspresyonlarını engelleyebileceğini ve inflamatuar sitokinleri ve proinflamatuar mediatörleri serbest bırakabileceğini ima eder. sinyal yolu aktivasyonu. Benzer sonuçlar, morinin IkBa'yı stabilize ederek NF-kB transkripsiyon faktörünün aktivitesini inhibe ettiğini, böylece iNOS'un indüklenebilir formunun yanı sıra COX-2, IL-6 ve TNF genlerinin ekspresyonunu azalttığını bulanlar tarafından da rapor edildi. (Manna ve diğerleri, 2007 ).

              ŞEKİL 6
              IκBa, p-IκBa, p65 ve p-p65'in protein ekspresyon seviyeleri. ( a ) RAW264.7 hücrelerinin protein bantları fotoğrafı. (b) RAW264.7 hücreleri için p-IκBa/IκBa'nın nispi protein ifadesi. (c) RAW264.7 hücreleri için p-p65/p65'in nispi protein ifadesi. # p < .05, ### p < .001, işlenmemiş hücrelerle karşılaştırıldığında. * p < .05, ** p < .01, *** p < .001, LPS ile işlenmiş hücrelerle karşılaştırıldığında

              Yukarıdaki sonuçlar, BLF'nin, NF-κB sinyal yolu aktivasyonunu inhibe ederek RAW264.7 hücrelerinde LPS tarafından teşvik edilen enflamatuar reaksiyonu etkili bir şekilde hafifletebileceğini gösterdi. BLF'nin ana antiinflamatuar bileşenleri Q3R ve morindir.

              Git: 4. SONUÇLAR


              Bu çalışmada, BLF tedavisinin, antioksidan enzimlerin aktivitesini eski haline getirerek, hücre içi ROS içeriğini azaltarak ve NF-κB sinyal yolu aktivasyonunu bloke ederek, RAW264.7 hücrelerinde LPS ile uyarılan oksidatif stresi ve inflamatuar yanıtı önemli ölçüde azaltabileceğini kanıtladık. Q3R ve morin, BLF'nin en önemli antioksidan ve antiinflamatuar faktörleridir. Bu çalışma, BLF'nin doğal ve etkili bir antioksidan ve antiinflamatuar gıda katkı maddesi olarak geliştirilmesi için teorik bir temel sunmaktadır.

              Git: ETİK ONAY


              Bu araştırma için etik onayı gerekmedi.

              Git: TEŞEKKÜRLER


              Yazarlar araştırmada herhangi bir çıkar çatışması beyan etmemektedir. Yazarlar, Çin Ulusal Doğa Bilimleri Vakfı'ndan (31401496) alınan mali desteğe teşekkür eder.

              Git: notlar


              Cui, J. , Zong, W. , Zhao, N. ve Yuan, R. (2022). Morin ve quercetin 3-O-rhamnoside açısından zengin dulavratotu ( Arctium lappa L. ) yaprak flavonoidleri, RAW264.7 hücrelerinde lipopolisakarit kaynaklı inflamasyonu ve oksidatif stresi iyileştirir . Gıda Bilimi ve Beslenme , 10 , 2718–2726. 10.1002/fsn3.2875 [ CrossRef ] [ Google Akademik ]

              Git: VERİ KULLANILABİLİRLİK BEYANI


              Bu çalışmanın bulgularını destekleyen veriler, talep üzerine ilgili yazardan temin edilebilir. Veriler, gizlilik veya etik kısıtlamalar nedeniyle halka açık değildir.

              Git: REFERANSLAR
              • Bajalan, I. , Mohammadi, M. , Alaei, M. ve Pirbalouti, AG (2016). Farklı lavandin popülasyonlarından elde edilen ekstraktların toplam fenolik ve flavonoid içerikleri ve antioksidan aktivitesi . Endüstriyel Mahsuller ve Ürünler , 87 , 255–260. 10.1016/j.indcrop.2016.04.059 [ CrossRef ] [ Google Akademik ]
              • Caselli, A. , Cirri, P. , Santi, A. ve Paoli, P. (2016). Morin: Gelecek vaat eden doğal bir ilaç . Güncel Tıbbi Kimya , 23 , 774–791. 10.2174/0929867323666160106150821 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Chen, GL , Fan, MX , Wu, JL , Li, N. ve Guo, MQ (2019). Lotus plumule'den flavonoidlerin antioksidan ve antiinflamatuar özellikleri . Gıda Kimyası , 277 , 706–712. 10.1016/j.foodchem.2018.11.040 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Cheon, JH (2017). İnflamatuar barsak hastalığı olan Doğu Asyalı hastalarda anti-tümör nekroz faktör tedavisinin komplikasyonlarını anlamak . Journal of Gastroenterology and Hepatology (Avustralya) , 32 , 769–777. 10.1111/jgh.13612 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Cui, J. , Zeng, S. ve Zhang, C. (2021). Dulavratotu ( Arctium lappa L. ) yaprak flavonoidlerinin a-amilaz ve a-glukozidazı inhibe ederek anti-hiperglisemik etkileri . Uluslararası Gıda Bilimi ve Teknolojisi Dergisi , 57 ( 1 ), 541–551. 10.1111/ijfs.15026 [ CrossRef ] [ Google Akademik ]
              • Dhanasekar, C. , Kalaiselvan, S. ve Rasool, M. (2015). Bir biyoflavonoid olan Morin, RAW 264.7 makrofajlarında monosodyum ürat kristalinin neden olduğu enflamatuar bağışıklık tepkisini, enflamatuar aracıların, hücre içi ROS seviyelerinin ve NF-κB aktivasyonunun inhibisyonu yoluyla baskılar . PLoS Bir , 10 , e0145093. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
              • El-Kenawi, A. ve Ruffell, B. (2017). Enflamasyon, ROS ve mutagenez . Kanser Hücresi , 32 , 727–729. 10.1016/j.ccell.2017.11.015 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Fujiwara, N. ve Kobayashi, K. (2005). Enflamasyonda makrofajlar . Mevcut İlaç Hedefleri: Enflamasyon ve Alerji , 4 , 281–286. 10.2174/1568010054022024 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Guerra, JA, Molina, MF, Abad, MJ, Villar, AM ve Paulina, B. (2006). Tanacetum microphyllum'dan izole edilen flavonoidler tarafından indüklenebilir nitrik oksit sentaz ve siklooksijenaz-2 ekspresyonunun inhibisyonu . Uluslararası İmmünofarmakoloji , 6 , 1723–1728. 10.1016/j.intimp.2006.08.012 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Hotamışlıgil, GS (2006). Enflamasyon ve metabolik bozukluklar . Doğa , 444 , 860–867. 10.1038/nature05485 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Jamar, G. , Ribeiro, DA ve Pisani, LP (2021). Mikrobiyota-bağırsak-beyin ekseninde tetik iltihabı olarak yüksek yağlı veya yüksek şekerli diyetler . Gıda Bilimi ve Beslenmede Eleştirel İncelemeler , 61 ( 5 ), 836–854. 10.1080/10408398.2020.1747046 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Kawanishi, N. , Yano, H. , Yokogawa, Y. ve Suzuki, K. (2010). Egzersiz eğitimi, yüksek yağlı diyetle indüklenen obez farelerde hem makrofaj infiltrasyonunun baskılanması hem de M1'den M2 makrofajlarına fenotipik geçişin hızlanması yoluyla adipoz dokudaki iltihaplanmayı engeller . Egzersiz İmmünolojisi İncelemesi , 16 , 105–118. 10.1016/j.exger.2020.111091 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Lee, SB, Lee, WS, Shin, JS, Jang, DS ve Lee, KT (2017). Xanthotoxin, RAW 264.7 makrofajlarında AP-1, NF-κB ve JAK-STAT inaktivasyonu yoluyla LPS kaynaklı iNOS, COX-2, TNF-α ve IL-6 ekspresyonunu baskılar . Uluslararası İmmünofarmakoloji , 49 , 21–29. 10.1016/j.intimp.2017.05.021 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Li, Y. , Jiang, Y. , Chu, Q. , & Zheng, X. (2020). Farklı kökenlerden gelen Radix tetrastigma özü, RAW264.7 makrofajlarını LPS kaynaklı iltihaplanmaya karşı korur . Journal of Food Science , 85 , 1586–1595. 10.1111/1750-3841. 15113 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Li, Y. , Yao, J. , Han, C. , Yang, J. , Chaudhry, M. , Wang, S. , Liu, H. ve Yin, Y. (2016). Quercetin, iltihaplanma ve bağışıklık . Besinler , 8 ( 3 ), 1–14. 10.3390/nu8030167 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Lin, Y. , Lu, Y. , Song, Z. ve Huang, D. (2018). Quercus fabri Hance'in meşe palamudundaki endojen nişasta hidrolaz inhibitörlerinin karakterizasyonları . Gıda Kimyası , 258 , 111–117. 10.1016/j.foodchem.2018.03.001 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Liu, CL, Chiu, YT ve Hu, ML (2011). Fucoxanthin, kısmen pro-oksidan aktivitesi ile Nrf2/ARE sisteminin aktivasyonu yoluyla murin hepatik BNL CL.2 Hücrelerinde HO-1 ve NQO1 ekspresyonunu arttırır . Tarım ve Gıda Kimyası Dergisi , 59 , 11344–11351. 10.1021/jf2029785 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Liu, T. , Zhang, L. , Joo, D. ve Sun, SC (2017). Enflamasyonda NF-κB sinyali . Sinyal İletimi ve Hedefe Yönelik Tedavi , 2 , 23. 10.1038/sigtrans [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Loboda, A. , Damulewicz, M. , Pyza, E. , Jozkowicz, A. ve Dulak, J. (2016). Nrf2 / HO-1 sisteminin gelişimdeki rolü, oksidatif stres yanıtı ve hastalıklar: Evrimsel olarak korunan bir mekanizma . Hücresel ve Moleküler Yaşam Bilimleri , 73 , 3221–3247. 10.1007/s00018-016-2223-0 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Lumeng, CN, DeYoung, SM, Bodzin, JL ve Saltiel, AR (2007). Diyet kaynaklı obezite sırasında işe alınan adipoz doku makrofajlarının artan inflamatuar özellikleri . Diyabet , 56 ( 1 ), 16–23. 10.2337/db06-1076 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Manna, SK , Aggarwal, RS , Sethi, G. , Aggarwal, BB ve Ramesh, GT (2007). Morin (3,5,7,2',4'-pentahidroksiflavon), çeşitli karsinojenler ve enflamatuar uyaranlar tarafından indüklenen nükleer faktör-κB aktivasyonunu ortadan kaldırarak, nükleer faktör-κB-Düzenlenen gen ekspresyonunun baskılanmasına ve apoptozun yukarı-regülasyonuna yol açar . Clinical Cancer Research , 13 , 2290–2297. 10.1158/1078-0432.CCR-06-2394 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Mantovani, A. , Allavena, P. , Sica, A. ve Balkwill, F. (2008). Kansere bağlı inflamasyon . Doğa , 454 ( 7203 ), 436–444. 10.1038/nature07205 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Mohamad, A. ve Vahideh, HZ (2018). IL-6 sinyal yolları ve tip 2 diyabet gelişimi . İnflammofarmakoloji , 26 , 685–698. 10.1007/s10787-018-0458-0 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Qu, Y. , Wang, C. , Liu, N. , Gao, C. ve Liu, F. (2018). Morin, Nrf2 sinyal yolunu aktive ederek IL-1β-Uyarılmış insan osteoartrit kondrositleri üzerinde anti-inflamatuar etkiler sergiler . Hücresel Fizyoloji ve Biyokimya , 51 ( 4 ), 1830–1838. 10.1159/000495684 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Reshmitha, TR , & Nisha, P. (2021). Likopen, HepG2 hücrelerinde oksidatif stres modülasyonu yoluyla akrilamid ve glisidamit kaynaklı hücresel toksisiteyi hafifletir . Journal of Functional Foods , 80 , 104390. 10.1016/j.jff.2021.104390 [ CrossRef ] [ Google Akademik ]
              • Rodríguez-Bonilla, P. , Gandía-Herrero, F. , Matencio, A. , García-Carmona, F. ve López-Nicolás, JM (2017). ORAC, ABTS+ ve FRAP teknikleri kullanılarak dört stilbenin antioksidan kapasitesinin karşılaştırmalı çalışması . Gıda Analitik Yöntemleri , 10 ( 9 ), 2994–3000. 10.1007/s12161-017-0871-9 [ CrossRef ] [ Google Akademik ]
              • Tianzhu, Z. , Shihai, Y. ve Juan, D. (2014). Morinin, akciğer NLRP3 iltihaplanmasını baskılayarak lipopolisakarit kaynaklı akut akciğer hasarı üzerindeki etkileri . Enflamasyon , 37 ( 6 ), 1976–1983. 10.1007/s10753-014-9930-1 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Tsikas, D. (2017). Biyolojik numunelerde malondialdehit (MDA) ve akrabalarını ölçerek lipid peroksidasyonunun değerlendirilmesi: Analitik ve biyolojik zorluklar . Analitik Biyokimya , 524 , 13–30. 10.1016/j.ab.2016.10.021 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Tyagi, A. , Yeon, S.-J. , Daliri, E.-M. , Chen, X. , Chelliah, R. ve Oh, D.-H. (2021). UHPLC Q-TOF MS / MS kullanılarak Kore fermente kahverengi pirincin hedeflenmemiş metabolomikleri, potansiyel diyet antioksidan ve stres azaltıcı bileşiklerin bolluğunu ortaya koymaktadır . Antioksidanlar , 10 , 626. 10.3390/antiox10040626 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Wan, P. , Xie, M. , Chen, G. , Dai, Z. , Hu, B. , Zeng, X. ve Sun, Y. (2019). Ilex kudingcha'dan dikaffeoilkinik asitlerin lipopolisakkaritle işlenmiş RAW264.7 makrofajları ve potansiyel mekanizmalar üzerindeki anti-enflamatuar etkileri . Gıda ve Kimyasal Toksikoloji , 126 , 332–342. 10.1016/j.fct.2019.01.011 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Wang, J. , Guo, C. , Wei, Z. , He, X. , Kou, J. , Zhou, E. , Yang, Z. ve Fu, Y. (2016). Morin, lipopolisakarit ile uyarılmış birincil sığır meme epitel hücrelerinde nükleer faktör-κB ve mitojenle aktive olan protein kinaz (MAPK) sinyal yollarının aşağı regülasyonu yoluyla inflamatuar sitokin ekspresyonunu baskılar . Süt Ürünleri Bilimi Dergisi , 99 , 3016–3022. 10.3168/jds.2015-10330 [ PubMed ] [ CrossRef ] [ Google Akademik ]
              • Wellen, KE ve Hotamışlıgil, GS (2005). Enflamasyon, stres ve diyabet . Journal of Clinical Investigation , 115 , 1111–1119. 10.1172/JCI200525102 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Xiong, XQ , Geng, Z. , Zhou, B. , Zhang, F. , Han, Y. , Zhou, YB , Wang, JJ , Gao, XY , Chen, Q. , Li, YH , Kang, YM , & Zhu, GQ (2018). FNDC5, obezitede AMPK aracılı makrofaj polarizasyonu yoluyla yağ dokusu iltihabını ve insülin direncini azaltır . Metabolizma: Klinik ve Deneysel , 83 , 31–41. 10.1016/j.metabol.2018.01.013 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Xu, X. , Huang, Y. , Xu, J. , He, X. , & Wang, Y. (2020). Dut meyvesinden (Morus alba L.) anti-nöroinflamatuar ve antioksidan fenoller . Journal of Functional Foods , 68 , 103914. 10.1016/j.jff.2020.103914 [ CrossRef ] [ Google Akademik ]
              • Xue, LL , Wu, WS , Ma, X. , Pei, HY , Tang, MH , Kuang, S. , Cai, XY , Wang, L. , Li, Y. , Zhang, RJ , Hong, F. , Peng , AH , Ye, HY ve Chen, LJ (2020). Millettia pulchra'dan yeni izoflavonoidler ile RAW264.7 murin hücrelerinde LPS kaynaklı inflamasyonun modülasyonu . Bioorganic Chemistry , 97 , 103693. 10.1016/j.bioorg.2020.103693 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Ye, L. , Liang, S. , Guo, C. , Yu, X. , Zhao, J. , Zhang, H. ve Shang, W. (2016). Yağ dokusunda M1 makrofaj aktivasyonunun berberin tarafından inhibisyonu, insülin direncini artırır . Yaşam Bilimleri , 166 , 82–91. 10.1016/j.lfs.2016.09.025 [ PubMed ] [ CrossRef ] [ Google Scholar ]
              • Zhang, L. , Han, YJ , Zhang, X. , Wang, X. , Bao, B. , Qu, W. ve Liu, J. (2016). Luteolin, yağ dokusu makrofajlarında AMPKa1 sinyalini aktive ederek farelerde obezite ile ilişkili insülin direncini azaltır . Diyabetoloji , 59 , 2219–2228. 10.1007/s00125-016-4039-8 [ PubMed ] [ CrossRef ] [ Google Akademik ]

              Yorum yap


              • #8
                Arctigenin'in PMA/ionomisin ile uyarılan lenfosit aktivasyonu üzerindeki inhibitör etkisi

                Cheng-Hong Sun , Xin-Qiang Lai , Li Zhang , Jing Chun Yao , Yong-Xia Guan , Li-Hong Pan , Ying Yan
                • PMID: 24974465
                Soyut


                Bu çalışma, arctigenin'in (Arc) fare T lenfositlerinin hücre aktivasyonu, sitokin ekspresyonu, proliferasyonu ve hücre döngüsü dağılımı üzerindeki etkisini araştırdı. Fare lenfositleri, lenf düğümünden hazırlandı ve Forbol-12-miristat-13-asetat (PMA)/İyonimisin (İyon) ve/veya Arc ile işlendi. CD69, CD25, sitokinler, proliferasyon ve hücre döngüsü, akış sitometrisi ile test edildi. Sonuçlar, 1,00 mikromol x L(-1)'den daha düşük konsantrasyonlarda, Arc'ın kültürlenmiş lenfositlerde belirgin olmayan hücre hasarı ifade ettiğini, ancak CD69 ve CD25'in yanı sıra TNF-'nin ifadesini önemli ölçüde azaltabildiğini gösterdi. PMA/İyon ile uyarılan lenfositler üzerinde alfa, IFN-gama, IL-2, IL-4, IL-6 ve IL-10. Aynı zamanda Arc, PMA/İyon ile aktive olan lenfositlerin proliferasyonunu da inhibe edebildi ve lenfosit G0/G1 faz döngüsü durması sergiledi.

                Yorum yap


                • #9
                  Arctigenin'in geleneksel Çin tıbbında domuz circovirus tip 2 üzerindeki antiviral aktivitesi

                  Ji Chen 1, Wentao Li 2, Erguang Jin 3, Çigai O 2, Weidong Yan 2, Hançun Yang 4, Shiyu Gong 3, Yi Guo 3, Şulin Fu 3, Xiabing Chen 3, Shengqiang Ye 3, Yunguo Qian 5
                  üyelikler genişletmek
                  • PMID: 27234554
                  • DOI: 10.1016/j.rvsc.2015.10.012
                  Soyut

                  Arctigenin (ACT), anti-viral ve anti-inflamatuar etkilere sahip geleneksel Arctium lappa L. (Compositae) bitkisinden ekstrakte edilen bir fenilpropanoid dibenzilbutirolakton lignandır. Burada, geleneksel Çin tıbbında bulunan ACT'nin domuz sirkovirüs tip 2 (PCV2) üzerindeki antiviral aktivitesini in vitro ve in vivo olarak araştırdık. Sonuçlar, 15.6-62.5μg/mL ACT dozunun PK-15 hücrelerinde PCV2 proliferasyonunu önemli ölçüde engelleyebileceğini gösterdi (P<0.01). Tehdit aşılamasından 0, 4 veya 8 saat sonra 62,5 μg/mL ACT dozlaması, PK-15 hücrelerinde 1MOI ve 10MOI proliferasyonunu önemli ölçüde inhibe etti (P<0,01) ve aşılamadan 4 saat veya 8 saat sonra ACT dozunun inhibe edici etkisi, Dozlamadan 0 saat sonra (P<0.01). PCV2 enfeksiyonuna karşı fare yüklemesi ile yapılan in vivo test, 200μg/kg ACT'nin intraperitoneal enjeksiyonunun akciğerlerde, dalaklarda ve inguinal lenf düğümlerinde PCV2 proliferasyonunu önemli ölçüde inhibe ettiğini ve ribavirine benzer bir etkiyle ACT'nin PCV2'ye karşı bir antiviral ajan olarak etkinliğini gösterdiğini gösterdi. in vitro ve in vivo. Dolayısıyla bu bileşik, domuzları PCV2 enfeksiyonuna karşı koruyan bir ilaç olarak hizmet etme potansiyeline sahip olabilir.
                  Anahtar Kelimeler: Antiviral aktivite; arktigenin; Domuz sirk virüsü tip 2.

                  Telif Hakkı © 2015 Elsevier Ltd. Tüm hakları saklıdır.

                  Yorum yap


                  • #10
                    Dulavratotu Kökünün Sağlığa Faydaları, Kullanımları Ve Yan Etkileri


                    Dulavratotu kökü çok eski zamanlardan beri holistik tıpta ve Çin tıbbında hazımsızlık, diyabet, hormonal dengesizlik vb. sorunların tedavisine yardımcı olan bir bitki olarak kullanılmaktadır. Dulavratotu bitkisinin tamamı yüksek oranda özelliklere sahiptir - tohumları ve yaprakları kurutulabilir ve çapak yağı elde etmek için kullanılabilir, yaprakları ve sapları da bitkisel ve alternatif tıp alanlarında önemli ölçüde faydalıdır. Dulavratotu çayı tüm dünyada yaygın olarak bilinirken, Japonlar bitkiyi yemeklerinde bile kullanırlar.

                    Dulavratotu
                    Dulavratotu kökleri uzun ve grimsi beyaz renklidir. Gözle görülür şekilde çekici olmayan kökler, insan vücuduna büyük fayda sağlar. Kan ve cilt için önemli bir detoksifikasyon ajanı görevi görür . Köklerde bulunan fitokimyasalların da esasen saça fayda sağladığı düşünülmektedir.

                    Dulavratotu iri yaprakları, kalbi andıran şekli ile yünlü bir dokuya sahip koyu yeşil renklidir. Enginarla aynı familyadan olan dulavratotu kökleri tatlımsı keskin bir tada sahipken, yaprakları enginara benzer bir tat bırakır.

                    Dulavratotu Besin Değeri
                    Yaygın olarak arctium olarak bilinen dulavratotu, esasen toksinleri ortadan kaldırarak kanı saflaştıran detoksifiye edici bir madde olarak bilinir. Doğası gereği terletici ve idrar söktürücüdür ve dulavratotu kökünden çıkarılan yağ, fitosteroller ve esansiyel yağ asitleri açısından oldukça zengindir.

                    Dulavratotu bitkisi, orantılı miktarlarda lif, magnezyum , potasyum ve B6 vitamini içermesinin yanı sıra büyük miktarlarda antioksidanlar içerir . Dulavratotu kökü riboflavin, folik asit, piridoksin , niasin E vitamini ve C vitamini içerir .

                    100 Gram Başına Besin Değerleri
                    72kalori
                    0,2 grToplam yağ
                    5 mgSodyum
                    308 miligramPotasyum
                    17 grToplam karbonhidrat
                    1,5 grProtein Vitaminler ve mineraller

                    0.04Kalsiyum
                    %5C vitamini
                    %4Ütü
                    %10B-6 Vitamini
                    %9Magnezyum Dulavratotu Sağlık Faydaları


                    Ayurvedik tedavide dulavratotu kökleri ve bitki parçaları kullanılır. Cilt problemlerini tedavi etmek için kullanılan anti-inflamatuar ve antibakteriyel özellikler içerir. Dulavratotu kökünün karaciğer ve saç diğer sağlık sorunları için faydaları aşağıda belirtilmiştir. Ayrıca dulavratotu kökünü farklı şekillerde nasıl tüketebileceğinizi veya kullanabileceğinizi de kontrol edin. Bazı yan etkiler sunar, hamilelikte tüketirken deneyimli bir kişiye danışmak gerekir.

                    Dulavratotu kökünün cilt bakımı için faydaları
                    Detoksifiye edici ve iyileştirici özelliklerle zenginleştirilmiş dulavratotu kökü, akne, kızamık , egzama gibi cilt problemlerini etkili bir şekilde tedavi eder ve kuru ciltle mücadele eder. Dulavratotu sağlıklı bir cilde kavuşmak için içten çay şeklinde, dışarıdan yağ şeklinde sürülerek ya da yapraklarının öğütülerek yulaf ezmesi eklenerek hazırlanan bir yüz maskesi olarak tüketilebilir. Yara izi ve donukluktan arınmış taze ve sağlıklı bir cilt verir.

                    Kilo kaybı için dulavratotu kökü kullanımı
                    Dulavratotu, diforetik özelliklerinden dolayı, vücuttaki toksinleri detoksifiye etmek ve vücut sistemlerinin işleyişini geliştirmek amacıyla vücuttan atılmasına yardımcı olur. Dulavratotu kökü kilo vermeye yardımcı olur ve kilo vermek isteyen kişilerin günlük diyetlerine dahil edilebilir . Dulavratotu kalorisi çok düşük olduğu için, doğal olarak kilo vermek için ideal bir seçimdir.

                    Dulavratotu kökü bağışıklık sistemini güçlendirir
                    Dulavratotu kökü, vücudu ustaca detoksifiye etme kabiliyetine ek olarak, doğası gereği de antibakteriyeldir. Gereksiz toksinleri vücuttan atarak, aynı zamanda bakterilerden kurtulmaya ve gelecekteki istilaları önlemeye yardımcı olur; böylece vücudun bağışıklık sistemini güçlendirir.

                    Dulavratotu kökü artrit ağrısına iyi gelir
                    Dulavratotu, anti-enflamatuar özelliklerdeki etkinliği sayesinde, artrit ile ilişkili semptomları ve ağrıyı hafifletmeye yardımcı olur . Özellikle dulavratotu kökünden hazırlanan çayın, osteoartrit ve şiddetli eklem ağrısından mustarip kişilerde genellikle görülen iltihaplanmayı ve oksidatif stresi azalttığı bilinmektedir .

                    Kanser hastaları için dulavratotu kökü
                    Araştırmalar, dulavratotu kökünün yüksek kanserle mücadele özellikleriyle donatıldığını gösteriyor . Dulavratotu, anti-enflamatuar, anti-oksidatif ve detoksifikasyon gibi özellikleri sayesinde vücuttaki kanserli hücrelerin büyümesini ve çoğalmasını engeller. Bağışıklık sistemini güçlendirme özelliği aynı zamanda vücuttaki kanserli tümörlerin tekrarına izin vermeyecek şekilde kullanılmasını sağlar.

                    Dulavratotu kökü sindirim sistemini iyileştirir
                    Dulavratotu kökü, vücudu tüm doğal olmayan ve gereksiz maddelerden arındırmadaki yüksek etkinliği sayesinde hazımsızlık, asitlik ve kabızlık gibi sorunları tedavi eder . İnsülin gibi polisakkaritlerin mevcudiyeti nedeniyle, maddeler iştahı artırırken müshil olarak hareket etmek için birleşirler.

                    Dulavratotu kökü kan şekerini dengeler
                    Dulavratotu kökü doğal olarak insülin içerir ve diyabetik hastaların kan şekeri seviyelerini doğal olarak kontrol etmeleri için mükemmel bir seçimdir. Araştırma ayrıca, dulavratotu esasen diyabetten kaynaklanan durumları, özellikle diyabetik retinopati gibi bir durumu hafifletmek için kullanılabileceğini düşündürmektedir .
                    Karaciğer temizliği ve detoks için dulavratotu kökü
                    Dulavratotu kökünün en iyi ve oldukça etkili faydalarından biri olarak kabul edilen, karaciğer rahatsızlıklarını tedavi etme yeteneğidir. Detoks özelliği sayesinde karaciğerin her türlü zararlı kimyasallardan ve toksinlerden arınmasını sağlarken safranın da salgılanmasını sağlar. Bu, karaciğeri hepatit, safra taşı ve iltihaplanma gibi sorunlardan koruyan anti-kanserojen bir işlevle sonuçlanır.

                    Dulavratotu kökü bademcik iltihabına ve kesin boğaza iyi gelir
                    Dulavratotu, enflamatuar virüsün bakteriyel bir enfeksiyonundan kaynaklanan bademcik iltihabını tedavi ettiği yaygın olarak bilinmektedir . Dulavratotu kökleri, doku iyileşmesini sağlayarak, öksürüğü , boğaz ağrısını , ağrıyı hafifleterek ve iltihaplanmayı hafifleterek durumla savaşmaya yardımcı olur .

                    Romatizma aşısı
                    Dulavratotu kökü, herhangi bir enflamatuar ajanı vücuttan uzak tuttuğu bilinmektedir. Aynı zamanda gelişmiş kan dolaşımının uygulayıcısı olarak işlev görür. Bu nedenle romatizma denilen iltihaplı durumun tedavisinde ve/veya önlenmesinde etkili bir maddedir.

                    Soğuk algınlığında dulavratotu çayı
                    Dulavratotu, uzun zamandan beri yaygın tıpta bir bileşen olarak kullanılmaktadır. Ateş , boğaz ağrısı, soğuk algınlığı ve öksürüğü tedavi etmek için yaygın olarak kullanılmaktadır . Dulavratotu kökü, anti-enflamatuar, anti-bakteriyel ve anti-piretik özelliklere sahip olduğundan, bahsedilenler gibi sorunların üstesinden gelmeye yardımcı olur. Ayrıca terletici özelliğinden dolayı dulavratotu vücudun terlemesine yardımcı olur ve bu eylem sonucunda ateşi düşürür.

                    Dulavratotu böbrek taşına iyi gelir
                    Doğal bir detoksifiye edici olan dulavratotu kökü, istenmeyen tüm toksinlerin vücuttan atılmasını ve vücudun zararlı kimyasallardan arınmasını sağlar. Etkili detoksifikasyon özelliklerine ek olarak, dulavratotu diüretik özellikleri aktif bir böbrek sistemi sağlayarak böbrekte enfeksiyon, böbrek taşı ve böbrek yetmezliği olasılığını ortadan kaldırır.

                    Dulavratotu Kökünün Kullanım Alanları
                    Dulavratotu, kanser, artrit, böbrek yetmezliği ve diyabet gibi sorunları tedavi etmek ve önlemek için geleneksel ve Çin tıbbında yaygın olarak kullanılmaktadır . Ayrıca kilo vermeye, sağlıklı bir vücut, cilt ve saç kazanmaya yardımcı olur. Öksürük, soğuk algınlığı gibi temel sorunlardan romatizma, bademcik iltihabı ve artrit gibi büyük sorunlara kadar dulavratotu kökünün hepsini etkili bir şekilde hafiflettiği bilinmektedir.

                    Dulavratotu Yan Etkileri ve Alerjileri
                    Çiçeklere alerjisi olan kişiler, dulavrat otunun genellikle ilişkili olduğu durumları tedavi etmek için uygun bir yardımcı olmadığını görebilir. Dulavratotu kanın pıhtılaşmasını tetiklemesiyle de bilinir, bu nedenle kanama bozukluğu olan kişilerin kullanımından uzak durması önerilir . Hamile ve emziren kadınların fetüsü çok nadiren etkilediğine inanıldığı için bitkiyi kullanmamaları tavsiye edilir.

                    Dulavratotu Yetiştiriciliği
                    Menşei Avrupa'da olan dulavratotu, iyileştirici özellikleri nedeniyle Kuzey Amerika ve Fransa'da geniş çapta yayıldı. Bitki, azot bakımından zengin nemli toprak gibi kumlu kilden oluşan bir yaşam alanıdır. Ohio'da ve Amerika Birleşik Devletleri'nde yaygın olarak yetiştirilmektedir. Türkiye'de dulavratotu bitkisinin nazardan koruduğu kabul edilir. Bu bitkinin incelenmesi, İsviçreli mucit George de Mestral tarafından cırt cırt icadına yol açtı.

                    Yorum yap


                    • #11
                      Arctium lappa L'den elde edilen polifenoller, doksorubisin kaynaklı kalp yetmezliğini iyileştirir ve farelerde bağırsak mikrobiyota kompozisyonunu iyileştirir

                      Xiaonan Wu 1, Nianfeng Zhang 1, Juan Kan 1, Sixue Tang 1, Rui Sun 1, Zhihao Wang 1, Meng Fei Chen 1, Haziran Liu 1, Changhai Jin 1
                      üyelikler genişletmek
                      • PMID: 33864278
                      • DOI: 10.1111/jfbc.13731
                      Soyut


                      Bu çalışmada, Arctium lappa L'den (ALPP) elde edilen saflaştırılmış polifenollerin doksorubisin (DOX) kaynaklı kalp yetmezliği üzerindeki iyileştirici etkisi araştırıldı. Sonuçlar, ALPP ön tedavisinin kazein kinaz ve laktat dehidrojenaz aktivitelerini önemli ölçüde azalttığını, enflamatuar indekslerin (TNF-a ve NO) seviyelerini düşürdüğünü ve DOX ile indüklenen farelerde antioksidan stresi hafiflettiğini ve böylece kalp yetmezliği sendromunun azalmasına yol açtığını gösterdi. Ayrıca, 16s yüksek verimli dizilemeye göre, ALPP tedavi grubunda Lactobacillaceae, Muribaculaceae ve Ruminococcaceae bolluğunda artış ve Proteobacteria, Enterobacteriaee ve Escherichia_Shigella bolluğunda azalma gözlendi. ALPP, kısa zincirli yağ asitleri (SCFA'lar) üreten bakterilerin bolluğunu önemli ölçüde artırabilir ve ardından SCFA'ların artışını teşvik edebilir. Sonuç olarak ALPP, DOX kaynaklı kalp yetmezliğinin tedavisinde terapötik bir alternatif olabilir. PRATİK UYGULAMALAR: Arctium lappa L'nin (ALPP) doksorubisin (DOX) kaynaklı kalp yetmezliği üzerindeki etkisi araştırıldı. ALPP'den polifenollerin biyolojik aktivitesi üzerine daha ileri çalışmalar için deneysel bir temel sağladı. Sonuçlar, ALPP'nin DOX kaynaklı kalp yetmezliğini önemli ölçüde iyileştirebileceğini ve bağırsak mikrobiyota kompozisyonunu iyileştirebileceğini gösterdi. Elde edilen sonuçlar, fonksiyonel gıda endüstrisinde kalp yetmezliği için alternatif bir tedavi olarak ALPP'nin potansiyel uygulamasını sağlayabilir. ALPP'den polifenollerin biyolojik aktivitesi üzerine daha ileri çalışmalar için deneysel bir temel sağladı. Sonuçlar, ALPP'nin DOX kaynaklı kalp yetmezliğini önemli ölçüde iyileştirebileceğini ve bağırsak mikrobiyota kompozisyonunu iyileştirebileceğini gösterdi. Elde edilen sonuçlar, fonksiyonel gıda endüstrisinde kalp yetmezliği için alternatif bir tedavi olarak ALPP'nin potansiyel uygulamasını sağlayabilir. ALPP'den polifenollerin biyolojik aktivitesi üzerine daha ileri çalışmalar için deneysel bir temel sağladı. Sonuçlar, ALPP'nin DOX kaynaklı kalp yetmezliğini önemli ölçüde iyileştirebileceğini ve bağırsak mikrobiyota kompozisyonunu iyileştirebileceğini gösterdi. Elde edilen sonuçlar, fonksiyonel gıda endüstrisinde kalp yetmezliği için alternatif bir tedavi olarak ALPP'nin potansiyel uygulamasını sağlayabilir.
                      Anahtar Kelimeler: Arctium lappa L; bağırsak mikrobiyotresi; kalp yetmezliği; polifenoller; kısa zincirli yağ asitleri.

                      © 2021 Wiley Süreli Yayınlar LLC.

                      Yorum yap


                      • #12
                        Arctigenin, sıçanlarda monokrotalinin neden olduğu pulmoner arteriyel hipertansiyonu önler

                        Wei-Long Jiang ,† Xiao Han ,† Yu-Feng Zhang ,† Qing-Qing Xia , Jia-Ming Zhang ,ve Feng Wang
                        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                        Git: Soyut


                        Pulmoner arteriyel hipertansiyon (PAH) gelişiminin ayırt edici özellikleri, pulmoner vasküler düz kas hücrelerinin proliferasyonunu, oksidatif stresi, inflamasyonu ve pulmoner arterin yeniden şekillenmesini içerir. Arctigenin, Arctium lappa'nın biyoaktif bir bileşenidir.çeşitli hastalıklarda anti-inflamatuar ve antiproliferatif etkiler sergileyen; ancak, pulmoner arterler üzerindeki etkileri hala belirsizdir. Bu çalışma, arktigenin'in PAH'ı önlemedeki etkinliğini araştırmayı amaçladı. Monokrotalin (MCT) enjekte edilen sıçanlarda aşamalı olarak PAH gelişti. Arctigenin tedavisi (50 mg/kg/gün, intraperitoneal) sağ ventrikül sistolik basıncını ve pulmoner arteriyel yeniden şekillenmeyi iyileştirdi, enflamatuar sitokinlerin ekspresyonunu azalttı ve akciğerlerdeki pulmoner vasküler düz kas hücrelerinin proliferasyonunu sınırladı. Mekanik olarak, arctigenin, akciğerlerde MCT'nin neden olduğu NLRP3, kaspaz-1 ve interlökin 1-beta ekspresyonunun yükselmesini etkili bir şekilde inhibe etti. Bu sonuçlar, arktigenin'in, en azından kısmen, antiinflamatuar, antioksidan,

                        Git: giriiş
                        Pulmoner arteriyel hipertansiyon (PAH), pulmoner arter basıncında ciddi bir artışa, sağ ventrikül (RV) yetmezliğine ve ölüme neden olabilen, pulmoner damar sisteminde yapısal değişiklikler gösteren ilerleyici ve ölümcül bir hastalıktır. 1 PAH'ın patogenezi hala belirsiz olsa da, kanıtlar PAH gelişiminin inflamatuar aktivasyon, endotel disfonksiyonu ve hem intima hem de mediada hücresel proliferasyon dahil olmak üzere vasküler yeniden şekillenme ile ilişkili olduğunu düşündürmektedir. 2 Endotelin reseptörü antagonistleri ve fosfodiesteraz inhibitörleri gibi kronik PAH için mevcut tedaviler, esas olarak vazodilatasyona neden olarak pulmoner arter direncini azaltmak için tasarlanmıştır. Bununla birlikte, bu yaklaşımlar esas olarak semptomatik rahatlama sağlar ve tatmin edici bir klinik sonuca sahip değildir.3

                        Proinflamatuar sitokin interlökin 1-beta (IL-1β) PAH'ta hayati bir role sahiptir. 4,5 NLR proteini NLRP3, bir adaptör ASC ve pro-caspase-1'den oluşan NLRP3 enflamasyonu, IL-1β ve PAH'ın aktivasyonunda rol oynamıştır. 6 Arctigenin (ARC), antikanser aktivite, antioksidan aktivite ve anti-inflamatuar aktivite dahil olmak üzere çeşitli biyolojik özelliklere sahip Arctium lappa'nın biyoaktif bir bileşenidir . 7 Önceki çalışmamız, ARC'nin nöroinflamasyonu inhibe ederek deneysel inmede nöroprotektif etkiler gösterebileceğini bildirdi. 8Ayrıca yakın zamanda yapılan bir çalışma, ARC'nin farelerde oksidatif stresi ve enflamasyonu inhibe ederek lipopolisakarit (LPS) kaynaklı akut akciğer hasarını azalttığını göstermiştir. 9 En yakın zamanda, ARC'nin NLRP3 enflamasomunun inhibisyonu yoluyla inmeyi azalttığı bildirilmiştir. 10 Her şeyden önce, sıçanda arktigenin farmakokinetik çalışması, 50 mg kg -1'de optimal ARC dozunun sıçanlara etkili seviyelerde bileşik sağlayabileceğini göstermiştir . 11Bu bulgular göz önüne alındığında, bu çalışma, ARC'nin sıçanlarda NLRP3 inflamatuarını inhibe ederek PAH'ı azaltıp azaltmadığını araştırmak için tasarlanmıştır. Sıçanlar, vasküler yeniden şekillenme, pulmoner arter düz kas hücrelerinin (PASMC'ler), oksidatif stres ve upregülasyon dahil olmak üzere insan pulmoner hipertansiyonunun birincil ve ikincil formlarının birkaç önemli yönünü taklit eden tek bir monokrotalin (MCT) enjeksiyonundan sonra şiddetli PAH geliştirir. inflamatuar sitokinler. ARC'nin PASMC proliferasyonu ve inflamasyonu üzerinde yararlı etkiler gösterip göstermediğini araştırdık.

                        Git: Malzemeler ve yöntemler

                        arctigenin hazırlanması
                        Arctigenin, Sigma-Aldrich'ten (St. Louis, MO, ABD) satın alınmıştır ve kimyasal yapısı aşağıdaki gibidir:
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-u1.jpg'dir.
                        Hayvan modeli
                        Hayvan kullanım protokolleri, Nanjing Üniversitesi Çin Tıbbı Hayvan Bakım ve Kullanım Komitesi tarafından onaylandı. Erkek Sprague-Dawley fareleri (200-250 g), Nanjing Üniversitesi Çin Tıbbı Laboratuvarı Hayvan Merkezi (Nanjing, Çin) tarafından sağlandı. Bu araştırma protokolü, Jiangyin Geleneksel Çin Tıbbı Hastanesinde Kurumsal Hayvan Bakım Komitesi (201534) tarafından onaylanmıştır.

                        Yetişkin sıçanlar , araç veya ARC almak üzere aşağıdaki gruplara (her grupta n = 6 hayvan) rastgele ayrıldı : (1) kontrol hayvanları (Kontrol); (2) MCT (60 mg kg -1 SC, bir kez)-tedavi edilmiş hayvanlar (MCT); veya (3) MCT tedavisinden (ARC) sonra ARC (50 mg/kg/gün, ip) alan MCT ile tedavi edilmiş hayvanlar. MCT grubuna ARC tedavisinden 24 saat önce bir kez MCT verildi ve 28 gün boyunca aynı şekilde ARC yerine salin verildi. ARC dozu, 50 mg kg -1 arktigenin ön tedavisinin farelerde LPS ile indüklenen akut akciğer hasarını önemli ölçüde azalttığı önceki çalışmalara dayanıyordu. 9

                        Hemodinamiğin değerlendirilmesi
                        MCT enjeksiyonundan dört hafta sonra sıçanlara pentobarbital (60 mg kg -1 , ip) ile anestezi uygulandı . Sağ ventrikül sistolik basıncı (RVSP), mikrotip Millar basınç kateteri ile sağ kalp ponksiyonu ile değerlendirildi. 12 Kalp atış hızı, bir ekokardiyografi makinesi (VisualSonics, Kanada) ile ölçülmüştür. Hemodinamik analizden sonra, histolojik değerlendirme veya biyokimyasal ölçümler için sol akciğer parçaları ve küçük intrapulmoner arterlerin izole segmentleri çıkarıldı.

                        RV hipertrofisinin ölçümü
                        Kalbin diseksiyonundan sonra, sol ventrikül (LV) duvarı ve ventriküler septumdan ayrıldıktan sonra RV duvarı tartıldı. RV serbest duvar ağırlığının tibia uzunluğuna oranı, RV hipertrofisinin bir indeksi olarak hesaplandı (vücut ağırlığındaki veya LV kütlesindeki değişikliklerden etkilenmeyen). Akciğer dokuları %4 paraformaldehit içinde sabitlendi, parafine gömüldü ve kesitleri alındı. Kesitler hematoksilin ve eozin (HE) ile boyandıktan sonra ışık mikroskobu (Inverted Floresan Mikroskop, Olympus, Japonya) ile incelendi. Morfometrik analiz için dış çapı 25–100 μm olan pulmoner arterler seçildi. 12Medial duvar kalınlığı şu şekilde hesaplandı: medial kalınlık (%) = medial duvar kalınlığı/dış çap × 100. Her sıçandan rastgele seçilen yirmi damar değerlendirildi ve ortalama değer hesaplandı.

                        Hücre proliferasyonu ve apoptoz deneyleri
                        PASMC'leri görselleştirmek için a-düz kas aktini için immünofloresan etiketleme yapıldı. Hücre proliferasyonu ayrıca, proliferatif hücre nükleer antijenine (PCNA) karşı bir monoklonal antikor kullanılarak distal pulmoner damarların duvarlarında da değerlendirildi. Distal pulmoner damarlar morfoloji ile tanımlandı. PCNA-pozitif hücrelerin yüzdesi, rastgele seçilen 10 alanda hesaplandı. ARC'nin in vitro antiproliferatif etkilerini değerlendirmek için birincil insan PASMC'leri, ARC'nin (1 μg mL -1 ) varlığında veya yokluğunda trombosit türevli büyüme faktörü (PDGF; 10 ng mL - 1) ile in vitro olarak uyarıldı.). ARC'nin hücre proliferasyonu üzerindeki inhibe edici etkisi, bir CCK-8 kiti ile test edildi. Kısaca, PASMC'ler, %80 konfluansta 96 oyuklu plakalara ekildi ve ARC'li veya ARC'siz PDGF ile işlendi. Canlı hücreler, absorbansın bir mikroplaka okuyucu (TECAN, Salzburg, Avusturya) ile 450 nm'de değerlendirildiği CCK-8 ile tespit edildi. Ek olarak, ARC'nin PASMC'lerin hücre apoptozu üzerindeki etkileri TUNEL ile araştırılmış ve akış sitometrisi ile nicelleştirilmiştir.

                        Oksidatif stres seviyelerinin ölçümü
                        Akciğer dokuları toplandı ve bir Polytron homojenleştirici ile buz gibi soğuk RIPA lizis tamponunda homojenleştirildi. Homojenatlar 3000 rpm'de 4 °C'de 15 dakika santrifüjlendi. Süpernatan, süperoksit dismutaz (SOD) ve malondialdehit (MDA) ölçümleri için toplandı. SOD aktivitesi, SOD tahlil kitleri (Jiancheng Bio-Technology, Nanjing, Çin) ile ölçüldü ve U mg −1 protein olarak ifade edildi. Lipit peroksidasyonu için bir belirteç ve oksidatif stresin kararlı bir göstergesi olan lipid peroksit ürünü MDA, bir MDA kiti (Jiancheng Bio-Technology, Nanjing, Çin) kullanılarak tiyobarbitürik asit (TBA) testi ile incelendi ve nmol mg −1 protein olarak ifade edildi . .

                        Batı lekesi
                        Akciğer dokuları toplandı ve daha önce tarif edildiği gibi homojenleştirildi ve ardından 10 000 x g'de santrifüjlendi.20 dakika Yükleme tamponu ile karıştırılan eşit miktarlarda toplam protein, %10 sodyum dodesil sülfat-poliakrilamid jel elektroforezi (SDS-PAGE) ile ayrıldı ve elektroforetik olarak poliviniliden diflorür (PVDF) zarlarına (Millipore, Billerica, MA, ABD) aktarıldı. Zarlar daha sonra %5 yağsız süt ile 1 saat süreyle bloke edildi ve β-aktine karşı birincil antikorlarla (1 : 1000, Celi Signaling Technologies, Beverly, MA, ABD) inkübe edildi; kaspaz-1 (1 : 500, Hücre Sinyal Teknolojileri), NLRP3 (1 : 500, Hücre Sinyal Teknolojileri) ve IL-1β (1 : 1000, Hücre Sinyal Teknolojileri). Ayrıca membranlar, IDye800CW konjuge sekonder antikor ile inkübe edildi. Protein bantları, Odyssey görüntüleme sistemi (LICOR) tarafından yakalandı.

                        Kantitatif gerçek zamanlı PCR
                        Kantitatif gerçek zamanlı PCR (qRT-PCR), daha önce bildirildiği gibi mRNA ifadesini analiz etmek için kullanıldı. Primerler şu şekildeydi: IL-1β (duyu 5'-CACCTCTCAAGCAGAGCACAG-3'; antisens 5'-GGGTTCCATGGTGAAGTCAAC-3'); IL-6 (duyu 5'-AGCCACTGCCTTCCCTACTTCA-3'; anlamsız 5'-GCCATTGCACAACTCTTTTCTCA-3'); MCP-1 (duyu 5'-CTCTTCCTCCACCACTATGC-3'; anlamsız 5'-CTTCTGTCATACTGGTCACTTC-3'); ICAM-1 (duyu 5'-CCTTCCTCACCGTGTACTGG-3'; anlamsız 5'-AGCGTAGGGTAAGGTTTCTTGC-3'); ve β-aktin (duyu 5'-GGAGATTACTGCCCTGGCTCCTA-3'; antisens 5'-GACTCATCGTACTCCTGCTTGCTG-3'). Bağıl ifade β-aktin ile normalleştirildi.

                        istatistiksel analiz
                        Veriler, ilgili kontrol ortalama değerlerine göre normalleştirildi ve ortalama ± SEM olarak ifade edildi. Verilerin istatistiksel analizleri, varyans analizi ve ardından çoklu karşılaştırmalar için Scheffe'nin post hoc testi ile gerçekleştirildi. P < 0.05 değeri istatistiksel olarak anlamlı kabul edildi.

                        Git: Sonuçlar
                        ARC, RVSP, RV hipertrofisi ve pulmoner arter yeniden şekillenmesinde MCT'nin neden olduğu artışı önler
                        MCT'ye maruz kalan sıçanlar, MCT enjeksiyonundan 28 gün sonra önemli pulmoner hipertansiyon geliştirdi. ARC tedavisi, MCT enjekte edilen sıçanlarda 4 haftalık bir süre boyunca RVSP'yi önemli ölçüde önledi (Şekil 1A). MCT gruplarında, PAH'ın bir sonucu olarak belirgin RV hipertrofisi ve pulmoner arterlerin medial kalınlığında artış gelişmiştir. Bu patolojik değişiklikler ARC tedavisi ile zayıflatılmıştır (Şekil 1B–D). MCT ile tedavi edilen sıçanlar, Kontrollere kıyasla düşük bir kalp hızı gösterdi; ancak, tedavi edilmemiş MCT ve ARC ile tedavi edilmiş muadilleri arasında hiçbir fark bulunmadı (Şekil 1E).
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-f1.jpg'dir.
                        Şekil 1
                        ARC'nin MCT'nin neden olduğu pulmoner hipertansiyon üzerindeki etkileri. (A) MCT enjeksiyonundan 21 gün sonra artan RV sistolik basıncı ile gösterildiği gibi, MCT enjekte edilen sıçanlarda pulmoner hipertansiyon progresif olarak gelişti. ARC tedavisi pulmoner hipertansiyon gelişimini engellemiştir. (B) RV hipertrofisi, sıçanlarda RV ağırlığı : tibia uzunluğu oranı ile gösterildi. ARC tedavisi RV hipertrofisini önledi. (C) Sıçanlarda arteriyol duvar kalınlığını karşılaştıran temsili hematoksilin ve eozin (HE) boyama görüntüleri. (D) Arterioller (dış çapta 25-100 μm) için medial kalınlık yüzdesinin kantitatif analizi, ARC'nin, Kontrollere kıyasla MCT ile tedavi edilen sıçanlarda medial duvar kalınlığını azalttığını göstermektedir. (E) MCT ile tedavi edilen sıçanlar, Kontrollere kıyasla düşük bir kalp hızı gösterdi; ancak, işlenmemiş MCT ve ARC ile işlenmiş muadilleri arasında hiçbir fark bulunmadı. Veriler ortalama ± SEM olarak ifade edilir. *P < 0,05 - Kontrol; # P < 0,05 vs. ARC yok. ARC, PASMC'lerin çoğalmasını engeller


                        MCT gruplarında, MCT enjeksiyonundan 28 gün sonra küçük pulmoner arterlerde düz kas hücresi kütlesinde belirgin bir artış gözlendi. ARC tedavisi, MCT ile tedavi edilen sıçanların damarlarında PASMC kütlesindeki artışı engelledi (Şekil 2A). Pulmoner dirençli damarların medial hipertrofisi, MCT'nin neden olduğu pulmoner hipertansiyonda artan PCNA-pozitif proliferatif vasküler hücre sayısına paralel olarak meydana geldi. Bununla birlikte, PASMC kütlesinin normalleşmesi doğrultusunda, ARC ile tedavi edilen hayvanlarda PCNA-pozitif hücrelerin sayısı önemli ölçüde azaldı (Şekil 2B ve C). İn vitro deneyler, ARC'nin PDGF'yi (48 saat boyunca 10 ng mL -1 ) önlediğini ve kültürlenmiş PASMC'lerin çoğalmasını uyardığını gösterdi (Şekil 3A). Antiproliferatif etkilerin belirgin olduğu konsantrasyon aralığında ARC, PASMC'lerde apoptozu indüklemedi (Şekil 3B).
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-f2.jpg'dir.
                        İncir. 2
                        ARC, sıçanlarda MCT'nin neden olduğu pulmoner hipertansiyonda PASMC'lerin çoğalmasını inhibe eder. (A) α-düz kas aktini için immünofloresan etiketleme (yeşil), vasküler düz kas hücrelerini tanımlamak için kullanıldı. (B) MCT- ve MCT artı ARC ile tedavi edilmiş sıçanların küçük pulmoner arterlerinin duvarındaki PCNA-pozitif çekirdekler (kahverengi). (C) (B) için niceleme analizi. Veriler ortalama ± SEM olarak ifade edilir. * P < 0,05 - Kontrol; # P < 0,05 vs. ARC yok.
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-f3.jpg'dir.
                        Şek. 3
                        ARC, PASMC'lerin in vitro proliferasyonunu inhibe eder . (A) PDGF (48 saat boyunca 10 ng mL -1 ), ARC (10 mol L -1 ) tarafından önlenen insan PASMC proliferasyonunu uyarır . Veriler ortalama ± SEM'dir. * P < 0,05 - ARC yok; # P < 0,05 - yalnızca PDGF. (B) ARC, PASMC'lerde apoptotik hücre ölümünü uyarmaz. ARC, akciğerlerdeki oksidatif stresi azaltır


                        Pek çok kanıt, oksidatif stresin PAH'ta nedensel bir rolü olduğunu göstermektedir. 13 Oksidatif stresin ARC (günde kg başına 50 mg) tarafından inhibisyonu, SOD aktivitesinin korunmasının yanı sıra MDA'nın aşağı regülasyonu ile ilişkilendirilmiştir. SOD aktivitesi MCT tarafından inhibe edildi ve ARC tedavisi bu inhibisyonu tersine çevirdi (Şekil 4A). Ayrıca, gösterildiği gibiŞekil 4B, MCT, akciğer MDA düzeylerinde bir yükselmeye neden olurken, ARC bu yükselmeyi engellemiştir.
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-f4.jpg'dir.
                        Şekil 4
                        ARC, sıçan akciğerlerinde oksidatif stresi azaltır. ARC, MCT ile tedavi edilen sıçanların akciğerlerindeki oksidatif stresi bastırır. (A) MCT grubundaki SOD aktivitesi Kontrol grubundan daha düşüktü, ancak ARC grubunda MCT grubundan daha yüksekti. (B) MCT grubunun akciğerlerindeki MDA düzeyi Kontrol grubuna göre yüksek, ARC grubunda MCT grubuna göre daha düşüktü. Veriler ortalama ± SEM'i temsil eder. * Kontrol grubuna karşı P < 0.05 ; # MCT grubuna karşı P < 0.05 . n = grup başına 6 fare. ARC, enflamatuar gen ekspresyonunu zayıflatır


                        MCT ile tedavi edilen sıçanların akciğerlerindeki IL-1β, IL-6, MCP-1 ve ICAM-1'in mRNA ekspresyonları, MCT ile indüklenen PAH sıçanlarında yukarı regüle edilirken, ARC tedavisi, her bir enflamatuar markörün ekspresyonunu önemli ölçüde zayıflattı (Şekil 5A–D).
                        Resim, çizim vb. içeren harici bir dosya. Nesne adı c8ra07892k-f5.jpg'dir.
                        Şekil 5
                        Kontrol farelerinin ve MCT enjekte edilmiş farelerin (MCT'den 28 gün sonra) akciğerlerindeki enflamatuar faktörlerin mRNA ifadelerinin analizi. mRNA ifadelerinin analizi, gerçek zamanlı kantitatif RT-PCR ile gerçekleştirildi. GAPDH normalleştirme için kullanıldı. (A) IL-6, (B) IL-1β, (C) MCP-1 ve (D) ICAM-1'in mRNA ifadesi. Veriler ortalama ± SEM olarak gösterilmiştir. * P < 0,05 - Kontrol; # P < 0.05 - resveratrol yok ( her grup için n = 6). ARC, MCT ile indüklenen PAH sıçanlarında enflamasyon aktivasyonunu inhibe eder


                        NLRP3 enflamatuar aktivasyonunun PAH ile sıkı bir şekilde ilişkili olduğu bildirildi. Da gösterildiği gibiŞekil 6, Kontrol grubuyla karşılaştırıldığında, MCT grubu NLRP3, kaspaz-1 p20 (aktif alt birim) ve IL-1β protein seviyelerini önemli ölçüde artırırken, ARC tedavisi akciğerlerdeki bu protein seviyelerini azalttı. Bu bulgular, ARC'nin MCT ile indüklenen PAH'lı sıçanlarda enflamasyonu kısmen NLRP3 enflamatuar aktivasyonunu inhibe ederek azaltabileceğini gösterdi.
                        Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı c8ra07892k-f6.jpg'dir.
                        Şekil 6
                        ARC, MCT ile tedavi edilen sıçanlarda akciğer NALP3 enflamatuar aktivasyonunu inhibe eder. Farklı sıçan gruplarında MCT enjeksiyonundan 4 hafta sonra akciğer NALP3, kaspaz-1 ve IL-1β ekspresyonunu gösteren Western blot. NALP3 (A), kaspaz-1 (B) ve IL-1β (C)'nin nispi protein seviyeleri, GAPDH ile normalizasyondan sonra belirlendi. Veriler ortalama ± SEM'dir. * Kontrol grubuna karşı P < 0.05 ; # MCT grubuna karşı P < 0.05 . n = grup başına 6.
                        Git: Tartışma


                        Arctium lappa L.'den bir ekstrakt olan ARC, sistemik dolaşımda sitoprotektif, antioksidatif, antiinflamatuar ve vazoprotektif özellikler gibi çeşitli farmakolojik aktivitelere sahiptir. 14 Burada, ARC tedavisinin, MCT ile tedavi edilen sıçanlarda pulmoner arterin yeniden şekillenmesini, pulmoner arter yükselmesinin ters ortalama basıncını ve RV hipertrofisini önemli ölçüde önlediğini gösteriyoruz. Ayrıca, sonuçlarımız ARC'nin, enflamatuar sitokinlerin ekspresyonunu azaltarak, pulmoner arter düz kas hücrelerinin proliferasyonunu inhibe ederek, oksidatif stresi azaltarak ve akciğerlerde NLRP3 sinyal yolunu aşağı doğru düzenleyerek MCT'nin neden olduğu PAH'ın ilerlemesini azaltabileceğini göstermektedir.

                        İnsan pulmoner hipertansiyonu ile uyumlu olarak, MCT ile indüklenen pulmoner hipertansiyon sıçanlarında belirgin medial duvar kalınlaşması gözlendi. ARC tedavisine yanıt olarak pulmoner hipertansiyonun ilerlemesinde ve medial duvar kalınlaşmasında belirgin bir azalma bulduk (Şekil 1A–C). Buna göre, MCT ile tedavi edilen sıçanların sağ ventrikülündeki adaptif hipertrofi de ARC tarafından önlendi (Şekil 1D). Bu nedenle mevcut sonuçlar, ARC tedavisinin pulmoner arteriyel yeniden şekillenmeyi önlediğini ve en azından MCT ile indüklenen PAH sıçan modelinde bir kardiyopulmoner koruyucu etki uyguladığını göstermektedir.

                        PASMC'lerin anormal çoğalması, PAH'ın patolojik bir özelliğidir. 15 Mevcut çalışma, MCT ile tedavi edilen hayvanların pulmoner dirençli damarlarında düz kas hücresi proliferasyonunun belirgin şekilde arttığını göstermektedir. ARC tedavisi normale yakın damar morfolojisini indükledi ve pulmoner arteriyel düz kas proliferasyonunu inhibe etti (Şekil 2A–C). İn vitro çalışmamız , ARC'nin, PASMC'lerde apoptotik hücre ölümünü artırmadan, kültürlenmiş PASMC'lerde PDGF'nin neden olduğu proliferasyonu önlediğini gösterdi.Şek. 3). Bu nedenle, pulmoner arteriyel düz kas proliferasyonunun ve vasküler yeniden yapılanmanın inhibisyonunun ağırlıklı olarak ARC'nin doğrudan etkisine bağlanması muhtemeldir.

                        Artan kanıtlar, insan pulmoner hipertansiyonunun ve deneysel hayvan modellerinin gelişimi ve ilerlemesinde inflamasyonun önemli bir rol oynadığını desteklemektedir. 16 Örneğin, klinik pulmoner hipertansiyonun çeşitli formlarında, artan enflamatuar sitokin plazma seviyeleri ve enflamatuar hücrelerin pulmoner infiltrasyonu dahil olmak üzere kanıtlar temelinde inflamasyonun tanınması giderek artmaktadır. 17 Benzer şekilde, pulmoner hipertansiyonun hayvan modellerinde, fare ve sıçan akciğerlerinde artmış sayıda makrofaj tanımlanmıştır. 17Bu süreçler, PAH'ta vasküler yeniden şekillenmeye, kollajen birikimine ve PASMC proliferasyonuna ve göçüne katkıda bulunabilir ve sonunda pulmoner dirence ve ardından sağ kalp yetmezliğine yol açabilir. IL-1β, PAH'ın patogenezinde hayati bir role sahip prototipik çok işlevli bir sitokindir. 18,19 Önceki bulgularla uyumlu olarak, MCT ile tedavi edilen sıçanlarda IL-1β arttı ve diğer proinflamatuar sitokinler de yukarı doğru düzenlendi (Şekil 4). Ek olarak, doğal bir anti-enflamatuar ajan olan ARC, LPS kaynaklı akut akciğer hasarı fare modelinde günde kg başına 50 mg'lık bir dozda belirgin koruyucu etkiler göstermiştir. 9 Burada, MCT ile tedavi edilen sıçanlarda ARC tedavisinin enflamatuar sitokinlerin ekspresyonunu normalleştirdiğini bulduk (Şekil 4).

                        Enflamatuar reaksiyonlara ek olarak, giderek artan kanıtlar, oksidatif stresin pulmoner vasküler endoteli bozabileceğini ve PAH'ın sıçan modellerinde vasküler kas hücrelerinin proliferasyonunu indükleyebileceğini düşündürmektedir. 3 Ayrıca, PAH hastalarında oksidatif stres artışı gözlenirken, oksidatif stresin azalması klinik semptomların zayıflaması ile ilişkilendirilmiştir. 20 ARC tedavisinin MDA seviyelerini önemli ölçüde düşürdüğü ve SOD aktivitesini arttırdığı yönündeki bulgumuzla uyumlu olarak, ARC'nin birçok hastalıkta oksidatif stresi azalttığı daha önce bildirilmişti (Şekil 5A ve B). Bu nedenle ARC'nin antioksidatif etkileri, sıçanlarda MCT'nin neden olduğu PAH'ın ilerlemesini bloke etmeye de katkıda bulunabilir.

                        ARC'nin antioksidan etkilerinin akciğerdeki enflamatuar süreçlere müdahale ettiği mekanizmalar iyi anlaşılmamıştır. Son zamanlarda, birkaç çalışma, NLRP3 enflamasomunun çeşitli akciğer hasarı tiplerindeki rolünü vurgulamıştır. NLRP3 eksikliği olan fareler, hiperoksi kaynaklı akut akciğer hasarında bastırılmış bir inflamatuar yanıt ve körelmiş akciğer epitel hücre apoptozu gösterdi. 21 Ek olarak ROS, kaspaz-1 ve IL-1β salınımı için kritik olan NLRP3 aktivasyonunun merkezinde yer alır. 6,22 Deneysel PAH'ın patogenezinde inflamasyon, kaspaz-1 ve IL-1β'nın rolleri birçok çalışmada bildirilmiştir. 23 Son zamanlarda, ARC'nin nöronlarda NRLP3 aktivasyonunu etkili bir şekilde bloke ettiği ve böylece oksijen glikozdan yoksun nöronları koruduğu gösterilmiştir.10 Önceki çalışmalara uygun olarak, bu çalışmamız ARC'nin MCT ile tedavi edilen sıçanlarda NLPR3 iltihaplanmasını inhibe ettiğini ima eder. PAH patogenezinde oksidatif stres, inflamasyon ve IL-β'nın ilgili rollerinin yanı sıra reaktif oksidatif türler, enflamasom ve IL-1β arasındaki etkileşimlere dayanarak, ARC'nin antioksidatif etkisinin olduğunu öneriyoruz. PAH, oksidatif stres inhibisyonu yoluyla NLRP3 inflamatuarının inhibisyonuna katkıda bulunabilir.

                        Sonuç olarak, ARC tedavisinin pulmoner vasküler yeniden şekillenmeyi önemli ölçüde azaltarak, RVSP'yi, RV hipertrofisini ve kardiyomiyosit büyümesini artırarak MCT'nin neden olduğu PAH gelişimini önlediğini gösterdik. ARC'nin bu yararlı etkileri, en azından kısmen NLRP3 enflamatuar sinyal yolunun inhibisyonu yoluyla aracılık edilen antiproliferatif, antiinflamatuar ve antioksidatif etkilere bağlanabilir . Bu spesifik mekanizmaları doğrulamak ve ARC tedavisinin yerleşik PAH'ı tersine çevirebileceğini veya geciktirebileceğini belirlemek için gelecekteki çalışmalara ihtiyaç vardır.

                        Git: Çıkar çatışmaları Hiçbiri.
                        Git: Ek materyal
                        Git: teşekkürler
                        Bu çalışma, Wuxi Sağlık Bürosu (MS201534, MS201603), Şanghay Belediyesi Sağlık ve Aile Planlaması Komisyonu (201540301), Jiading Bölgesi Bilim ve Teknoloji Komitesi (JDKW-2016-W13) ve Şanghay Belediyesi Bilim ve Teknoloji araştırma hibeleri tarafından desteklenmiştir. Komite (18ZR14307000).

                        Git: Referanslar
                        • Rabinovitch MJ Clin. Yatırım. 2012; 122 :4306–4313. doi: 10.1172/JCI60658. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Liu D. Morrell NW Curr. Hipertans. 2013 ; 15 :632–637. doi: 10.1007/s11906-013-0393-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Csiszar A. Labinskyy N. Olson S. Pinto JT Gupte S. Wu JM Hu F. Ballabh P. Podlutsky A. Losonczy G. de Cabo R. Mathew R. Wolin MS Ungvari Z. Hipertansiyon . 2009; 54 :668–675. doi: 10.1161/HYPERTANSIONAHA.109.133397. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Burke DL Frid MG Kunrath CL Karoor V. Anwar A. Wagner BD Strassheim D. Stenmark KR Am. J. Physiol.: Akciğer Hücresi. Mol. Fizyol. 2009; 297 :L238–L250. doi: 10.1152/ajplung.90591.2008. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Yakında E. Holmes AM Treacy CM Doughty NJ Southgate L. Machado RD Trembath RC Jennings S. Barker L. Nicklin P. Walker C. Budd DC Pepke-Zaba J. Morrell NW Dolaşımı. 2010; 122 :920–927. doi: 10.1161/CIRCULATIONAHA.109.933762. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Tschopp J. Schroder K. Nat. Bağışıklık. 2010; 10 :210–215. doi: 10.1038/nri2725. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Kang HS Lee JY Kim CJ J. Ethnopharmacol. 2008; 116 :305–312. doi: 10.1016/j.jep.2007.11.030. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Fan T. Jiang WL Zhu J. Feng Zhang Y. Biol. eczane Boğa. 2012; 35 :2004–2009. doi: 10.1248/bpb.b12-00463. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Shi X. Sun H. Zhou D. Xi H. Shan L. Enflamasyon. 2015; 38 :623–631. doi: 10.1007/s10753-014-9969-z. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Zhang S. Jiang L. Che F. Lu Y. Xie Z. Wang H. Biochem. biyografiler. Res. komün. 2017; 493 :821–826. doi: 10.1016/j.bbrc.2017.08.062. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • He F. Dou DQ Hou Q. Sun Y. Kang TG Nat. Üretim Res. 2013; 27 :903–906. doi: 10.1080/14786419.2012.666745. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Kamezaki F. Tasaki H. Yamashita K. Tsutsui M. Koide S. Nakata S. Tanimoto A. Okazaki M. Sasaguri Y. Adachi T. Otsuji Y. Am. J. Solunum. kritik Bakım Med. 2008; 177 :219–226. doi: 10.1164/rccm.200702-264OC. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Suzuki YJ Steinhorn RH Gladwin MT Antioksid. Redoks Sinyali. 2013; 18 :1723–1726. doi: 10.1089/ars.2013.5193. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Zhao F. Wang L. Liu K.J. Ethnopharmacol. 2009; 122 :457–462. doi: 10.1016/j.jep.2009.01.038. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Jeffery TK Wanstall JC Pharmacol. orada. 2001; 92 :1–20. doi: 10.1016/S0163-7258(01)00157-7. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Nishimura T. Vaszar LT Faul JL Zhao G. Berry GJ Shi L. Qiu D. Benson G. Pearl RG Kao PN Dolaşımı. 2003; 108 :1640–1645. doi: 10.1161/01.CIR.0000087592.47401.37. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Voelkel NF Cool C. Lee SD Wright L. Geraci MW Tuder RM Chest. 1998; 114 :225S–230S. doi: 10.1378/chest.114.3_Supplement.225S. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Voelkel NF Tuder RM Bridges J. Arend WP Am. J. Solunum. Hücre Mol. Biol. 1994; 11 :664–675. doi: 10.1165/ajrcmb.11.6.7946395. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Rabinovitch MJ Clin. Yatırım. 2008; 118 :2372–2379. doi: 10.1172/JCI33452. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Reis GS Augusto Silveira AP'ye Karşı Jordao Jr AA Baddini-Martinez J. Poli Neto O. Rodrigues AJ Evora PR Pulm. sirk. 2013; 3 :856–861. doi: 10.1086/674764. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Fukumoto J. Fukumoto I. Parthasarathy PT Cox R. Huynh B. Ramanathan GK Venugopal RB Allen-Gipson DS Lockey RF Kolliputi N. Am. J. Physiol.: Cell Physiol. 2013; 305 :C182–C189. doi: 10.1152/ajpcell.00086.2013. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Davis BK Wen H. Ting JP Annu. Bağışıklık. 2011; 29 :707–735. doi: 10.1146/annurev-immunol-031210-101405. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                        • Wu J. Yan Z. Schwartz DE Yu J. Malik AB Hu G.J. Immunol. 2013; 190 :3590–3599. doi: 10.4049/jimmunol.1200860. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

                        Yorum yap


                        • #13
                          Endodontik intrakanal ilaçların antibakteriyel ve antifungal aktivitesi

                          ANDRADA TONEA , 1 MANDRA BADEA , 2 LIVIU OANA , 3 SORINA SAVA , 1 ve DAN VODNAR 4
                          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri PMC Sorumluluk Reddi
                          1 Protetik Diş Tedavisi ve Diş Malzemeleri Anabilim Dalı, Iuliu Hatieganu Tıp ve Eczacılık Üniversitesi, Cluj-Napoca, Romanya
                          2 Diş Hekimliğinde Önleme Bölümü, Iuliu Hatieganu Tıp ve Eczacılık Üniversitesi, Cluj-Napoca, Romanya
                          3 Anesteziyoloji ve Cerrahi Propedeutik Bölümü, Ziraat Bilimleri ve Veterinerlik Üniversitesi, Cluj-Napoca, Romanya
                          4 Gıda Bilimi ve Teknolojisi Bölümü, Tarım Bilimleri ve Veterinerlik Üniversitesi, Cluj-Napoca, Romanya
                          Yazışma adresi: or.julcfmu@aenot.adardna
                          Git: Soyut

                          Arka plan ve amaçlar

                          Mikrobiyal floranın kontrolünün her kök kanal tedavisinin kilit noktası olduğu gerçeği göz önüne alındığında, tüm kök kanal sisteminin sterilizasyonu her endodontistin ana hedefini temsil eder. Kök kanalı içinde bulunan mikroorganizmaların çeşitliliği ve ayrıca bazı bakteri türlerinin kanal içi ilaçlara direnci, sürekli olarak yeni endodontik ürünlerin geliştirilmesine yol açmıştır. Mevcut çalışma, farklı endodontik ürünlerin, piyasada bulunan iki, bir deneysel bitki bazlı ekstraktın ve iki kontrol maddesinin antibakteriyel ve antifungal özelliklerinin karşılaştırılmasına odaklanmaktadır. Yöntemler

                          Disk difüzyon tahlili, klorheksidin, kalsiyum hidroksit, Arctium lappa kök tozu ve Aloe barbadensis Miller jeli arasındaki bir karışım ekstraktı, klavulanik asitli Amoksisilin ve Flukonazolün (kontrol maddeleri olarak) antibakteriyel ve antifungal özelliklerini belirlemek için kullanıldı. Endodontik enfeksiyonlarda bulunan en yaygın mikroorganizmalardan ikisi seçildi: Enterococcus faecalis (ATCC 29212) ve Candida albicans ATCC(10231). Sonuçlar

                          Test edilen tüm maddeler, Aloe vera jeli ile Arctium lappa kök tozunun deneysel karışım özü de dahil olmak üzere, Enterococcus faecalis ve Candida albicans için disklerin çevresinde inhibisyon bölgeleri gösterdi. Çözüm

                          Arctium lappa kök tozu ve Aloe vera jelinin deneysel karışım özü, Enterococcus faecalis ve Candida albicans gibi çok dirençli mikroorganizmaları inhibe edebilmektedir.

                          Anahtar Kelimeler: disk difüzyon, antimikrobiyal, antifungal, endodontik, klorheksidin, kalsiyum hidroksit, Arctium lappa , Aloe vera
                          Git: Arka plan ve amaçlar

                          Tüm kök kanal sisteminin sterilizasyonu, her endodontik enfeksiyon vakasında terapötik bir anahtar adımı temsil eder. Yetersiz bir biyomekanik enstrümantasyon, kötü adapte edilmiş bir kök kanal dolgusu veya bir sızıntı işlemi yoluyla reenfeksiyon, dirençli endodontik mikroorganizmaların hayatta kalmasına yol açabilir [ 1 , 2 ].

                          Zamanla incelenen mikrobiyolojik kültürler, Enterococcus faecalis'in endodontik reinfeksiyon etiyolojisinde çok önemli bir rol oynadığını göstermiştir. Enterococcus faecalis, Gram pozitif, fakültatif anaerobik bir bakteridir. Alkole veya yüzey aktif maddelere karşı direnç gösterebilir ve aşırı yüksek pH, yüksek sıcaklıklar veya besin yokluğu gibi zorlu koşullarda hayatta kalabilir. Endodontik enfeksiyonlarda prevalansı %40'tır ve endodontik reenfeksiyonlarda %24 ila %77 arasında değişmektedir [ 3 , 4 ].
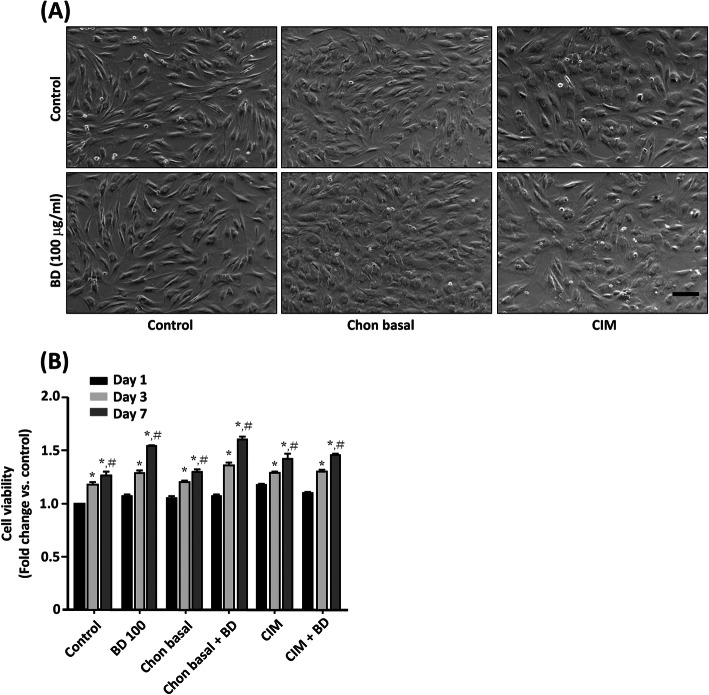
                          Araştırmacıların ana meşguliyeti endodontik bakterilerin incelenmesi olmasına rağmen, mayalar kök kanal enfeksiyonu ve yeniden enfeksiyonun oluşumunda çok önemli bir rol oynamaktadır. Candida cinsi ve özellikle Candida albicans, birincil endodontik enfeksiyonlu dişlerin kök kanallarından en sık geri kazanılan mayadır [ 5 ].

                          Candida albicans , saf kültürlerde tek başına istisnai bir şekilde izole edilmiştir, ancak genellikle Gram pozitif ve Gram negatif mikroorganizmalarla birlikte bulunabilir. Dentin tübüllerine yapışıp invaze olma ve şiddetli çevre koşullarında hayatta kalma kapasitesine sahiptir [ 6 ].
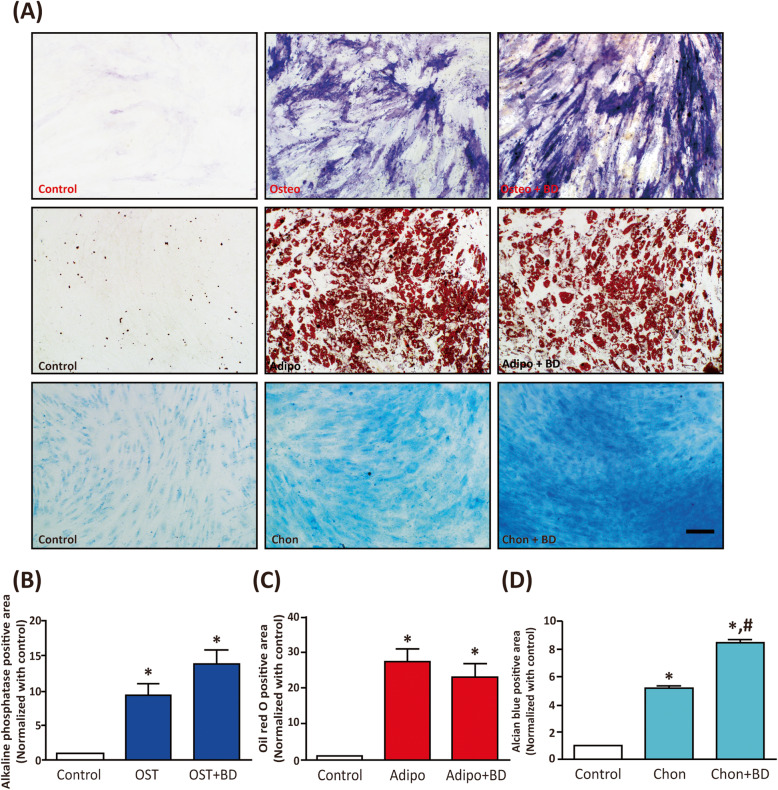
                          Araştırmacıların kanal içi irriganlar ve antiseptik maddelere olan ilgisi, mikroorganizmaların endodontik sistemden uzaklaştırılmasının öneminin daha fazla farkına vardıkça yıllar içinde artmıştır. Çeşitli etkilere ve terapötik özelliklere sahip bitki bazlı ürünler de dahil olmak üzere farklı antiseptik ve antibakteriyel maddeler geliştirilmiştir [ 7 ].

                          Bu çalışmanın amacı, bazı kanal içi ilaçların antibakteriyel ve antifungal özelliklerini karşılaştırmak ve böylece, Arctium lappa kök tozu ve Aloe vera jeli karışımından elde edilen bir karışım özüne dayanan deneysel bir antiseptik madde ortaya koymaktır.

                          Git: Materyaller ve metod

                          Bakteriyel suşlar, kültür koşulları ve test edilen maddeler

                          Antibakteriyel ve antifungal aktivitenin test edilmesi için aşağıdaki mikroorganizmalar ve kültür koşulları kullanıldı: Microbiologics, Saint Cloud'dan satın alınan iki bakteri suşu, bir fakültatif aerobik bakteri, Enterococcus faecalis (ATCC 29212) ve bir maya, Candida albicans (ATCC 10231) , Minnesota, ABD. Test edilen mikroorganizmalar American Type Culture Collection'dan temin edilmiştir. Bakteriler Enterococcus faecalis için Columbia agarda ve Candida albicans için Sabouraud agarda kültürlendi ve kültürler 4°C'de saklandı ve ayda bir alt kültürlendi. Kültür ortamı, Biomerieux, Lyon, Fransa'dan satın alındı.
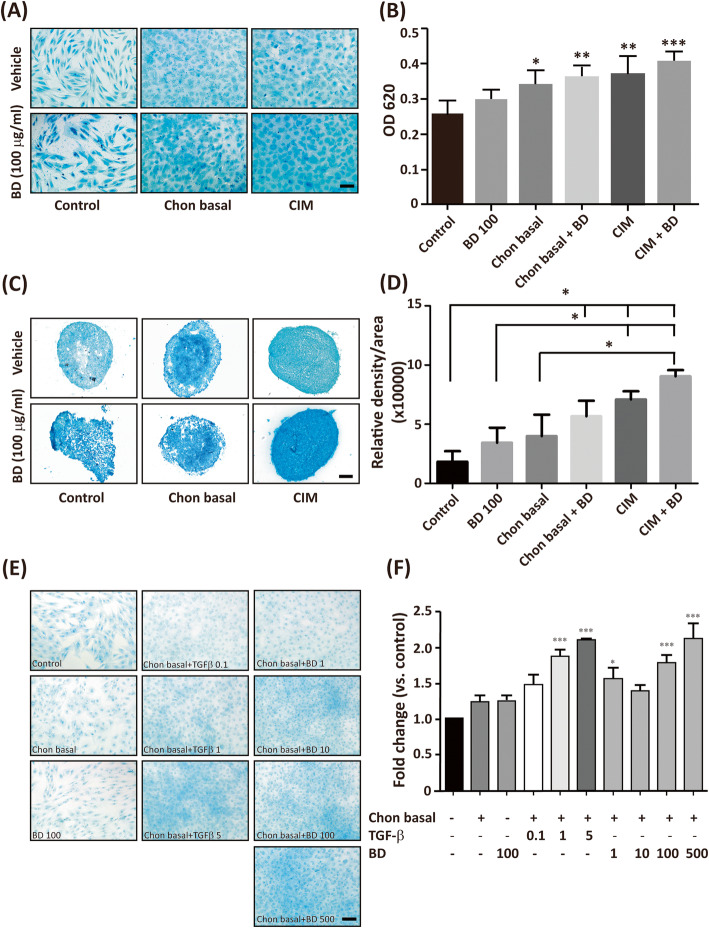
                          Aşağıdaki maddeler test edilmiştir: %2 klorheksidin jeli (Cerkamed), kalsiyum hidroksit (Calxyd-Spofa) ve bir bitki özü. Bitki özü şu şekilde elde edildi: 100 mg dulavratotu tozu 1 ml distile suda süspanse edildi, 8 saat karıştırıldı ve 0.45 μm Millipore filtreden süzüldü. Elde edilen dulavratotu kökü ekstresi 100 ml Aloe vera jeli ile karıştırıldı . Kontrol maddeleri olarak spesifik antibiyotikler ve antifungaller şu şekilde kullanılmıştır: Enterococcus faecalis için klavulanik asitli amoksisilin ve Candida albicans için Flukonazol . Disk difüzyon deneyi

                          Birincil tarama testi, Columbia agar ve Sabouraud agar yüzeyine eşit şekilde yayılmış, 10 8 CFU/mL Enterococcus faecalis ve 10 6 CFU/mL Candida albicans içeren 100 ul süspansiyon kullanılarak disk difüzyonu ile gerçekleştirildi . Steril 6 mm diskler, 20 ul %2 klorheksidin, 20 ul kalsiyum hidroksit ve 20 ul bitki bazlı ekstrakt içerecek şekilde üç kopya halinde kullanıldı ve işlendi. Bu diskler daha sonra aşılanmış agar üzerine yerleştirildi. Kontrol maddeleri ayrıca aşılanmış plakalara yerleştirildi.

                          Enterococcus faecalis için aşılanmış plaklar 48 saat 37°C'de gaz torbalarında (GenBag Co2, Biomerieux, Lyon, Fransa) inkübe edildi ve Candida albicans için aşılanmış plaklar 2-3 gün 30°C'de inkübe edildi. Disklerin etrafındaki inhibisyon bölgeleri, antimikrobiyal ve antifungal aktivitenin varlığını gösterdi. Sonuçların optimal doğruluğu için her tahlil üç kez tekrarlandı. Veri analizi

                          Test grupları arasındaki verilerin istatistiksel önemini araştırmak için ANOVA tek yönlü testi uygulanarak veri analizi yapıldı.

                          Git: Sonuçlar

                          Antimikrobiyal etkinlik testi

                          Enterococcus faecalis ve Candida albicans, test edilen bazı maddeler tarafından etkili bir şekilde inaktive edildi (Şekil 1). Enterococcus faecalis'in %2 klorheksidin için ortalama inhibisyon bölgesi 14,15 mm, kalsiyum hidroksit için 0,04 mm iken, bitki karışımı ekstresi ortalama 5,69 mm inhibisyon çapı gösterdi. Kontrol maddeleri (Amoksisilin ve klavulanik asit), 13.66 mm'lik bir ortalama inhibisyon çapı sergilemiştir (Tablo I).
                          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı cm-90-344f1.jpg'dir.
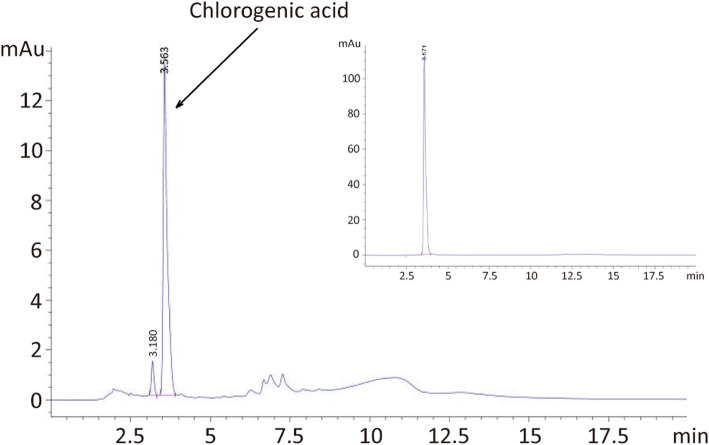
                          Şekil 1
                          Enterococcus faecalis için %2 klorheksidin, kalsiyum hidroksit, Amoksisilin ve klavulanik asit, deneysel karışım özü çevresinde inhibisyon bölgeleri gösteren antimikrobiyal etkinlik testi . Candida albicans için antimikrobiyal etkinlik testi, %2 klorheksidin, kalsiyum hidroksit, Flukonazol ve deneysel karışım özü çevresinde inhibisyon bölgeleri gösteriyor. Tablo I
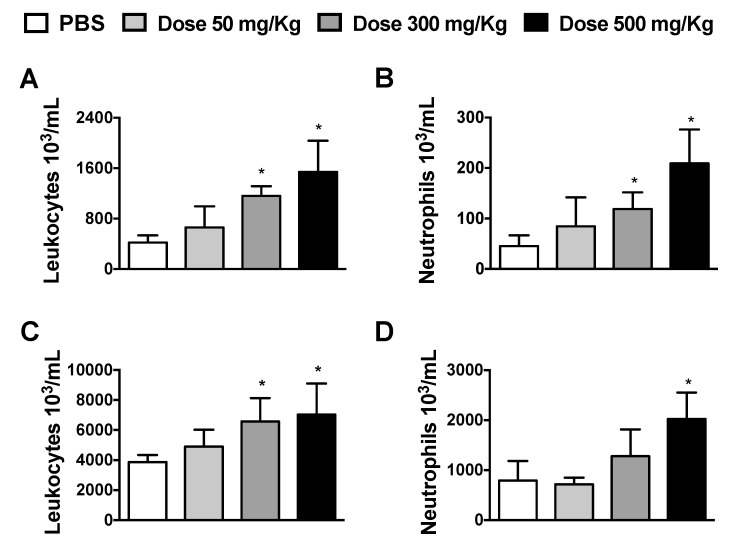
                          Antimikrobiyal etkinlik testi: test edilen maddelerin etrafındaki Enterococcus faecalis ATCC-29212 için inhibisyon bölgelerinin çapları (ortalama ve standart sapma) .
                          Kontrol 3 13.66 0,030
                          CHX %2 3 14.15 0,020
                          Ca(OH) 2 3 0.04 0,020
                          Çıkarmak 3 5.69 0,010
                          Ayrı bir pencerede aç
                          Candida albicans'ın %2 klorheksidin için ortalama engelleme çapı 12.18 mm idi, ardından bitki karışımı ekstraktının ortalama engelleme çapı 11.62 mm idi. Kalsiyum hidroksit için ortalama inhibisyon çapı 0.09 mm idi. Kontrol maddesi (Flukonazol), 12,68 mm'lik bir ortalama inhibisyon çapı sergilemiştir (Tablo II). Tablo II

                          Antimikrobiyal etkinlik testi: test edilen maddelerin etrafındaki Candida albicans ATCC-10231 için inhibisyon bölgelerinin çapları (ortalama ve standart sapma) .
                          Kontrol 3 12.68 0,026
                          CHX %2 3 12.18 0,017
                          Ca(OH) 2 3 0.09 0,026
                          Çıkarmak 3 11.62 0,020
                          Ayrı bir pencerede aç
                          Tüm test grupları, kontrol grubu ile karşılaştırıldığında istatistiksel olarak anlamlı bir fark gösterdi (p<0.05).

                          Git: Tartışma

                          Önceki araştırmalar, kök kanal tedavisi ajanları olarak farklı antiseptik ürünlerin etkinliğini değerlendirdi. Çeşitli çalışmalar klorheksidinin antimikrobiyal etkisini kanıtlamıştır. Klorheksidin , irrigasyon solüsyonu olarak kullanımından [ 8 ] doğrudan kök kanalının içinde jel formunda kullanımına [ 9 ] kadar, güvenilir bir antimikrobiyal ajan olarak bilinir.

                          Kalsiyum hidroksit çoğunlukla antiseptik özellikleri için kullanılır. Ancak, bu maddenin mekanizmaları hala incelenmektedir. Endodontik biyofilmlere karşı rolü ile ilgili olarak, çalışmalar kalsiyum hidroksitin intrakanal ilaçlar olarak kullanılan diğer maddeler kadar etkili olmadığını göstermiştir [ 10 ].

                          Antimikrobiyal endodontik tedaviyi geliştirmeye yönelik sürekli arayış içinde, bir dizi bitki üzerinde çalışıldı. Propolis , Morinda citrifolia (noni meyvesi), Marticaria recutitia (papatya), Melaleuca alternifolia (çay ağacı), Aloe vera ve Arctium lappa (dulavratotu), farmasötik özellikleri zaman içinde tanınan bazı örneklerdir [ 11 ].

                          Dulavratotu olarak da bilinen Arctium lappa , Avrupa'da yaygın olarak bulunan bir bitkidir [ 12 ] ve iyileştirici etkileri ile kabul edilmektedir. Geleneksel tıpta dulavratotu kökü, antioksidan ve antidiyabetik özellikleriyle biliniyordu. Arctuim lappa'nın diş hekimliğinde oral mikroorganizmalara ve ayrıca endodontik enfeksiyonlarla ilişkili mikroorganizmalara karşı antimikrobiyal etkisi çeşitli çalışmalar sırasında araştırılmış ve kanıtlanmıştır [ 13 , 14 ].

                          Aloe veranın antimikrobiyal, antifungal ve antiinflamatuar özellikleri tüm dünyada oldukça tanınmaktadır. Bitki, genel tıbbın farklı alanlarında ve aynı zamanda diş hekimliğinde de kullanılmaktadır. Periodontolojide oral diş macunu [ 15 ] veya periodontal ceplerde lokal bir ilaç olarak [ 16 ] kullanımından , endodontik enfeksiyonlarda mikrobiyal suşlara karşı Aloe vera jelinin kullanımına kadar , diş hekimliği alanlarının çok çeşitli özellikleri kapsanmıştır. bu bitki Endodontik tedavi ile ilgili olarak, Aloe veranın antimikrobiyal özellikleri daha önce araştırılmış ve diğer bitkiler ve antiseptik maddelerle karşılaştırılmıştır [ 17 ]. Aloe veranın etkinliğiöjenol bazlı ilaçlara kıyasla daha yüksek bir antimikrobiyal aktivite sergileyen süt dişlerinin kök kanallarında da çalışılmıştır [ 18 ].

                          Kök kanal sistemini dolduran çok çeşitli endodontik mikroorganizmalar ve ayrıca farklı metabolizmaları, tedavi sırasında uygulanan kanal içi pansumanlara yanıtı etkiler.

                          Candida albicans, doğrudan enfekte kök kanallarından tanımlanan baskın mayadır [ 19 ]. Farklı yüzeylere yapışma, enzim üretimi, morfolojik geçiş veya biyofilm oluşumu gibi çeşitli özellikler yardımıyla konakçı savunma sistemini azaltabilir [20 ] . Candida albicans daha önce tedavi edilmiş kök kanallarında yüksek oranda bulunur [ 21 ].

                          Enterococcus faecalis, antiseptik kök kanal ilaçlarına direnci ile bilinir. Primer endodontik enfeksiyonlarda sıklıkla bulunur, ancak önceden doldurulmuş kök kanallarının yeniden enfeksiyonu durumunda da bulunur. Enterococcus faecalis , biyofilmlerde diğer mikroorganizmalarla birlikte ve nadiren tek başına tek bir bakteri olarak bulunabilir [ 22 , 23 , 24 ].

                          Git: Sonuçlar

                          Bu çalışmaya dayanarak, %2 klorheksidin Enterococcus faecalis ve Candida albicans'a karşı en etkili antimikrobiyal aktiviteyi sergiler .

                          Kalsiyum hidroksit her iki mikroorganizmaya karşı çok düşük etkinlik gösterir ve tek başına antimikrobiyal bir madde olarak değil, diğer biyolojik ve kimyasal özellikleri nedeniyle kullanılmalıdır.

                          Arctium lappa kök tozu ve Aloe vera jelinden oluşan deneysel karışım özü, Candida albicans'a karşı çok etkilidir , ancak Enterococcus faecalis için daha küçük bir inhibisyon çapı sergiler . Bu sonuçlar göz önüne alındığında, bu ürünün antibakteriyel etkisinin değerlendirilmesi için daha ileri çalışmalara ihtiyaç vardır.

                          Endodontik bakterilerin biyofilmlerde organize olduğu gerçeği göz önüne alındığında, deneysel ürünün sadece tek mikroorganizmalara karşı değil, aynı zamanda karmaşık bakteri topluluklarına karşı davranışını belirlemek için daha fazla araştırma yapılmalıdır.

                          Git: Referanslar

                          1. Hwang JH, Chung J, Na HS, Park E, Kwak S, Kim HC. Çeşitli kök kanal dolgu malzemelerinin ve yöntemlerinin bakteriyel sızıntı direncinin karşılaştırılması: Konfokal lazer taramalı mikroskop çalışması. Tarama. 2015; 37 (6):422–428. [ PubMed ] [ Google Akademik ]
                          2. Siqueira JF, Jr, Rôças IN, Ricucci D, Hülsmann M. Tedavi sonrası apikal periodontitisin nedenleri ve yönetimi. Br Dent J.2014 ; 216 (6):305–312. [ PubMed ] [ Google Akademik ]
                          3. Stuart CH, Schwartz SA, Beeson TJ, Owatz CB. Enterococcus faecalis: kök kanal tedavisi başarısızlığında rolü ve yeniden tedavide güncel kavramlar. J End. 2006; 32 (2):93–98. [ PubMed ] [ Google Akademik ]
                          4. Sedgley C, Buck G, Appelbe O. Enterococcus faecalis'in kültür ve PCR kullanılarak endodontik hastalarda çoklu oral bölgelerde yaygınlığı. J End. 2006; 32 (2):104–109. [ PubMed ] [ Google Akademik ]
                          5. Shah N, Madhu KS, Murthy BS, Hemanth B, Mathew S, Nagaraj S. Birincil kök kanalı enfeksiyonlarında Candida albicans varlığının belirlenmesi: Bir in vitro çalışma. Endodonti. 2016; 28 (2):109–113. [ Google Akademik ]
                          6. O'Donnell LE, Millhouse E, Sherry L, Kean R, Malcolm J, Nile CJ, Ramage G. Polimikrobiyal Candida biyofilmleri: ağız boşluğundaki dostlar ve düşmanlar. FEMS Maya Çöz. 2015 Kasım; 15 (7) doi: 10.1093/femsyr/fov077. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                          7. Mohan S, Gurtu A, Singhal A, Vinayak V. Naturopati ve Endodonti-A Sinerjik yaklaşım. JDSOR. 2012 Ekim-Aralık;:27–29. [ Google Akademik ]
                          8. Haapasalo M, Shen Y, Wang Z, Gao Y. Endodontide irigasyon. Br Dent J.2014 ; 216 (6):299–303. [ PubMed ] [ Google Akademik ]
                          9. Sinha N, Patil S, Dodwad PK, Patil AC, Singh B. Kalsiyum hidroksit macunu, klorheksidin jeli ve her ikisinin bir kombinasyonunun intrakanal ilaç olarak antimikrobiyal etkinliğinin değerlendirilmesi: Bir in vivo karşılaştırmalı çalışma. J Conserv Dent. 2013; 16 (1):65–70. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                          10. Zancan RF, Vivan RR, Milanda Lopes MR, Weckwerth PH, de Andrade FB, Ponce JB, Duarte MA. Kanal İçi İlaç Olarak Kullanılan Kalsiyum Hidroksit Patlarının Antimikrobiyal Aktivitesi ve Fizikokimyasal Özellikleri. J End. 2016; 42 (12):1822–1828. [ PubMed ] [ Google Akademik ]
                          11. Pujar M, Makandar S. Endodontide bitkisel kullanım-A derlemesi. Int J Contemp Dent. 2011; 2 :34–37. [ Google Akademik ]
                          12. Tutin TG, Heywood VH, Burges NA, Moore DM, Valentine DH, Walters SM, Webb DA. Flora Europaea: Plantaginaceae'den Compositae'ye (ve Rubiaceae) Vol. 4. Cambridge University Press; 2006.s. 215. [ Google Akademik ]
                          13. Gentil M, Pereira JV, Sousa YT, Pietro R, Neto MD, Vansan LP, de Castro França S. Kanal içi pansumanlarda kullanılan bir fitoterapötik ajan olarak Arctium lappa'nın antibakteriyel aktivitesinin in vitro değerlendirilmesi. Fitoterapi Arş. 2006; 20 (3):184–186. [ PubMed ] [ Google Akademik ]
                          14. Groppo FC, Bergamaschi Cde C, Cogo K, Franz-Montan M, Motta RH, de Andrade ED. Fitoterapinin diş hekimliğinde kullanımı. Fitoterapi Arş. 2008; 22 (8):993–998. [ PubMed ] [ Google Akademik ]
                          15. Pradeep AR, Agarwal E, Naik SB. Aloe vera içeren ticari olarak temin edilebilen diş macununun klinik ve mikrobiyolojik etkileri: randomize, kontrollü bir klinik çalışma. J Periodontol. 2012; 83 (6):797–804. [ PubMed ] [ Google Akademik ]
                          16. Bhat G, Kudva P, Dodwad V. Aloe vera: Doğanın periodontal hastalığa yatıştırıcı şifacısı. J Indian Soc Periodontol. 2011; 15 (3):205–209. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                          17. Bhardwaj A, Ballal S, Velmurugan N. Morinda citrifolia, papain ve aloe vera (tümü jel formülasyonunda), %2 klorheksidin jeli ve kalsiyum hidroksitin doğal özlerinin Enterococcus faecalis'e karşı antimikrobiyal aktivitesinin karşılaştırmalı değerlendirmesi: Bir in vitro çalışmak. J Conserv Dent. 2012; 15 (3):293–297. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                          18. Kriplani R, Thosar N, Baliga MS, Kulkarni P, Shah N, Yeluri R. Süt dişlerinde kullanılan aloevera ile birlikte çeşitli kök kanal dolgu malzemelerinin antimikrobiyal etkinliğinin karşılaştırmalı değerlendirmesi: mikrobiyolojik bir çalışma. J Clin Pediatr Dent. 2013; 37 (3):257–262. [ PubMed ] [ Google Akademik ]
                          19. Waltimo TM, Haapasalo M, Zehnder M, Meyer J. Endodontik maya enfeksiyonlarıyla ilgili klinik yönler. Konuları Bitir. 2004; 9 :66–78. [ Google Akademik ]
                          20. Waltimo TM, Haapasalo M, Zehnder M, Meyer J. Endodontik maya enfeksiyonlarıyla ilgili klinik yönler. Konuları Bitir. 2004; 9 :66–78. [ Google Akademik ]
                          21. Siqueira JF, Jr, Sen BH. Endodontik enfeksiyonlarda mantarlar. Oral Surg Oral Med Oral Pathol Oral Radiol Endod. 2004; 97 (5):632–641. [ PubMed ] [ Google Akademik ]
                          22. Kumar J, Sharma R, Sharma M, Prabhavathi V, Paul J, Chowdary CD. Apikal periodontitisli dişlerin kök kanallarında Candida albicans varlığı ve endodontik tedavinin başarısızlığında olası rollerinin değerlendirilmesi. J Int Ağız Sağlığı. 2015; 7 (2):42–45. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                          23. Benbelaïd F, Khadir A, Abdoune MA, Bendahou M, Muselli A, Costa J. Hem planktonik hem de biyofilm durumunda oral çoklu ilaca dirençli Enterococcus faecalis'e karşı bazı uçucu yağların antimikrobiyal aktivitesi. Asya Pac J Trop Biomed. 2014; 4 (6):463–472. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                          24. Vivacqua-Gomes N, Gurgel-Filho ED, Gomes BP, Ferraz CC, Zaia AA, Souza-Filho FJ. Enfekte dişlerde ex vivo gerçekleştirilen tek veya çok ziyaretli kök kanal tedavilerinden sonra Enterococcus faecalis'in geri kazanımı. Uluslararası J. 2005; 38 (10):697–704. [ PubMed ] [ Google Akademik ]
                          25. Rôças IN, Siqueira JF., Jr Tedavi sonrası hastalığı olan kanal tedavili dişlerin mikrobiyotasının karakterizasyonu. J Clin Microbiol. 2012; 50 (5):1721–1724. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]

                          Yorum yap

                          Hazırlanıyor...
                          X