Duyuru

Collapse
No announcement yet.

Çentiyan Forte

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Çentiyan Forte

    ÇENTİYAN


    Çok Yıllık | 0,5-1,5m | 6-9 Aylar | Ca,Ho,Na | Kökleri | ▼

    Çentiyan, Enzian, Gentiana lutea
    Çentiyan Syn: Swertia lutea
    Sarı Çentiyan Asterias lutea
    Güşad otu

    Familyası: Çentiyangillerden, Enziangewâchse, Gentianaceae

    Drugları: Çentiyan kökü;Gentianae radix
    Çentiyan kökü çay, natürel ilaç, tentür ve ekstre yapımında kullanılmak-tadır ve korumaya alındığından toplanması yasaktır.

    Giriş: Çentiyan’nın bilinen 200 türü mevcut olup bunlardan Sarı Çentiyan şifa maksadı ile en çok ve en yaygın olarak kullanılan türdür. Bu nedenle burada sadece Çentiya’na yer vereceğiz. Çentiya’nın M.Ö (180-167) İlya Kralı Gentius tarafından kullanıldığı ve bu nedenle bu bitkinin Gentiana ismi ile anıldığı ve sonrada Plinius ve Dioskorides tarafından kullanıldığı bilinmektedir. İlk defa geniş çaplı araştırma ve tedavi deneyini Hahne-mann 1795’de gerçekleştirmiş ve onu diğer araştırmacılar takip etmiştir. Avrupa’nın Alpler, Prirenler ve Karpatlar gibi yüksek dağları ve çevresinde yetiştirmekte olup Türkiye’nin de Marmara ve Ege bölgesinin yüksek dağlarında (Bursa Uludağ ve Ödemiş Boz dağ) yetişmektedir. Bu bitkinin yok olma tehlikesi nedeni ile Avrupa’da korunmaya alınmış olup köklerinin sökülmesi yasaktır. Bitki uzman olmayanların bitki kökünü sökerek toplamaları çok zehirli ve tehlikeli olan Çöpleme kökü ile karış-tırılacağından yanlışlıkla toplanan kökler ölümlere sebep olabilir. Çünkü iki bitki birbirine çok benzer.

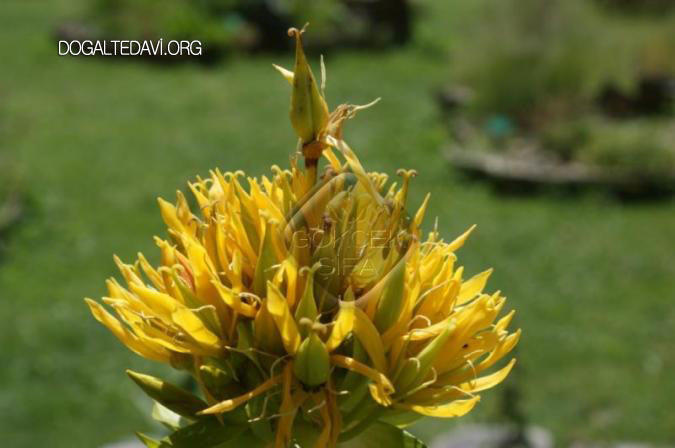
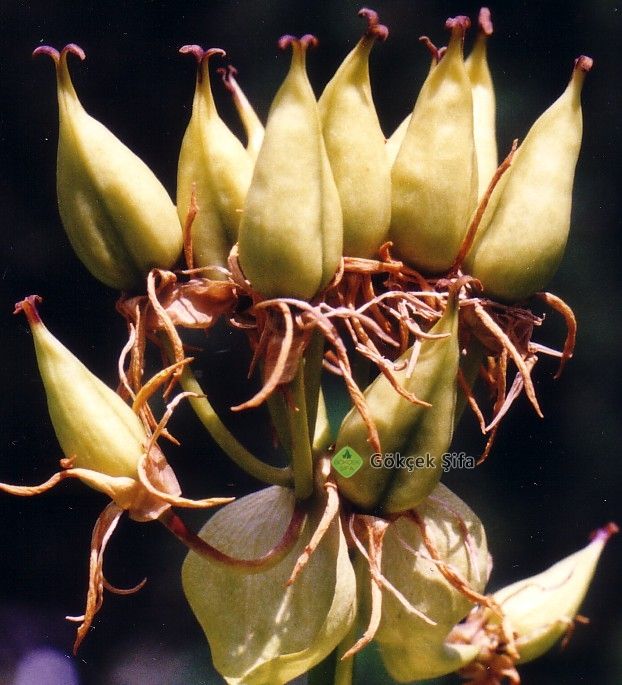
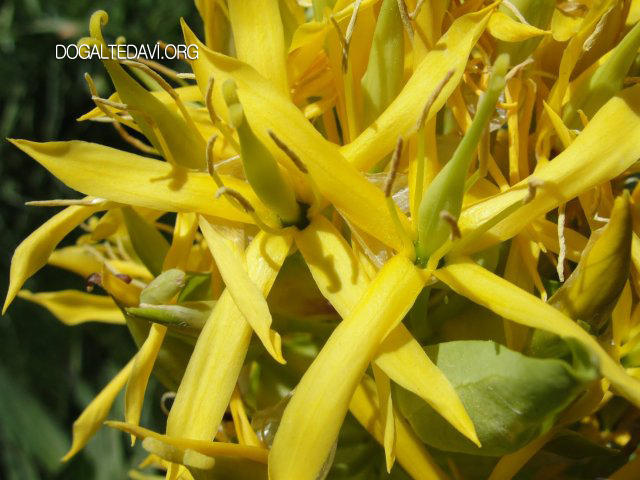
    Botanik: Çentiyan 50-150 cm boyunda gövdesi tüysüz, düz, yuvarlak, içi boş, sarımsı açık yeşil renkte, boyu 150 cm i bulabilir. Hatta nadiren 200 cm’de olduğu görülür. Yaprakları eliptik şekilde bir külah gibi yanları kalkık, mavimsi yeşil renkte, baştan uca doğru 5-7 adet yay şeklinde damarları uzanır, karşılıklı, bir sonraki ile çapraz, alt yaprakları 25-35 cm uzunluğunda 15-20 cm eninde olup üst yaprakları yanlara doğru çıktıkça küçülür. Çiçekleri yapraklarının külah şeklinde olması nedeniyle geriden içine sarı çiçekler doldurulmuş sepetleri andırır. Çiçek sepetinde 8-20 adet çiçek bulunur ve her çiçek kısa saplı, taç yaprakları altın sarısı renkli beş adet ve kama şeklindedir ve de döllenme tozlukları da aynı şekilde altın sarısı renktedir. Çiçekleri döllendikten sonra kapsüle dönüşür ve her kapsül takriben 100 tohum içerir. kökleri; ana ve yan köklerden oluşur, dış kabuğu grimsi esmer veya kırmızımsı esmer renkte bazen 100 cm uzunluğunda olabilir.

    Yetiştirilmesi: Korunmaya alındığından Avrupa ülkelerinde toplanması yasaktır. Bu nedenle Çentiyan’dan drog elde eden firmalar kendi çiftlikle-rinde kültür bitkisi olarak yetiştirmektedirler. Yetiştirmek için sonbaharda tohumları saksı, kasa, çamlık veya seralara ekilir ve Mayıs ortalarında tarla veya bahçelere 40x50 cm aralıklarla dikilir.
    Hasat zamanı: Sonbaharda sökülerek çıkarılan kökleri yıkanır, kesilir, kurutulur, şayet tentürü yapılacaksa taze olarak işlenir.

    Birleşimi: Çentiyan kökünün birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Secoiridoidglikozitler (Acı maddeler) %2-3,5 oranında olup bununda %90’ını Gentiopicrosid ve az miktarda (%0,03-0,1) Amarogentin içerir. Gentiopicrosidin (Gentiopikrin) acılık değeri 12.000 iken Ama-rogentinin acılık değeri 58.000.0000 olup bitki birleşimlerindeki en az maddedir.
    b) Xanthon türevleri (Ksantonlar); Gentisin, İzogentisin, Metilgentisin ve Gentisein en önemlileridir.
    c) Karbonhidrat türevleri; %30-55 arasında olup Sakarozlar, Genti-anozlar ve Gentiobiozları sayabiliriz.
    d) Ayrıca az miktarda Taninler ve Eterik yağlar içerir.

    Araştırmalar: Hayvanlar üzerinde bir düzine araştırmada Çentiyan ekstresi, tentürü veya kökünün bütün sindirim organlarındaki salgıları arttırıcı etkiye sahip olduğu tespit edilmiştir.
    1) GLATYZEL ve HACKENBERG 1967’de Çentiyan ekstresi ile yaptıkları araştırmalarda mide asidi safrayı arttırdığını tespit etmişlerdir. (O.Leeser II.486)
    2) UEKİ ve ekibi 1961’de Çentiyan kök ekstresi ile yaptığı araştırmalarda Urlara karşı etkili olduğu tespit edilmiştir. (LBH.II.486)
    3) BUCHNER Çentiyan kökü ile iki kişi üzerinde tedavi denemesi yapmış ve bu tedavi denemesi sonunda sindirim bozukluklarından; hazım-sızlık, kokuşma, ekşime, tahriş, bulantı, mide çevresindeki sıkışma, basınç iştahsızlık ve baş ağrısına karşı etkili olduğu tespit edilmiştir. WATZKE’de 2 denek üzerinde tedavi denemesi yapmış o da aynı neticeleri elde etmiştir. (LBH.II.486)
    4) Zimmermann ve ekibi 1988’de 23-51 yaşları arasındaki 8 hasta üzerinde Çentiyan tentürü ile 8 gün süren tedavi denemesi yapmış-lardır. Başka bir gruba ise Kınakına tentürü verilmiştir. Bu karşılaş-tırmalı tedavi sonunda Kınakına’nın ateş düşürücü özelliğinin büyük olduğu ve Çentiyan tentürünün de buna yaın sayılabileceği tespit edilmiştir. (H.H.B. VI.238)
    5) İltihaplı mide bağırsak rahatsızlıkları (gastrit ve enterit)olan 19 hasta üzerinde Çentiyan tentürü ile tedavi denemesi yapılmıştır ve bunlardan 16’sında iyileşme görülürken 3’ünde kötüleşme görülmüştür. (H.H.B. V.238)

    Tesir şekli: İştah açıcı, sindirim kolaylaştırıcı, safra ve mide asidini arttı-rıcı, immün sistemini arttırıcı (bağışıklık sistemini), zindelik verici, da-marları büzücü ve mikropları öldürücü özelliklere sahiptir.

    Kullanılması:
    a) Araştırmalara göre Çentiyan kökü tentürü ekstresi veya natürel ilacı başta sindirim zafiyeti, mide bağırsak iltihaplanmasına (gastrit ve enterit) karşı ve mide asidi ve safrayı arttırıcı olarak kullanılır.
    b) Komisyon E’nin 30/11/1985 tarih ve 223 nolu ve de 13/03/1990 tarih ve 50 nolu Monografi bildirisine göre başta sindirim rahatsızlıklarından; iştahsızlık, tıkanma ve şişkinliğe karşı kullanılabileceği beyan edilmiştir.
    c) Homeopati’ye göre başta sindirim rahatsızlıklarından; kokuşma, şiş-kinlik, hazımsızlık, bulantı ve iştahsızlık gibi rahatsızlıklara karşı kul-lanılır.
    d) Halk arasında; Mide-bağırsak üşütmesi ve zafiyeti, karaciğer fonk-siyon yetersizliği, mide easidi yetersizliği (hipoasiditat), şişkinlik, ha-zımsızlık, kramplı kabızlık, halsizlik ve dermansızlığa karşı kullanılır.

    Çayı: Çentiyan kökünü hem haşlama (Infus hem de kaynatma (dekokt) şeklinde hazırlanması mümkündür.
    a) 1 kahve kaşığı Çentiyan kökü demliğe konur ve üzerine 250-300 ml kaynar su doldurduktan sonra 5-10 dk demlenmesi beklenir ve sonra süzülerek içilir.
    b) 1 kahve kaşığı Çentiyan kökü demliğe konur ve üzerine 250-300 ml soğuk su ilave edilir 5-10 saat bekledikten sonra kaynatılır ve 5-10 dk demlenmeye bıraktıktan sonra süzülerek içilir.

    Çay Harmanları

    Gökçek İştah açıcı çay (şişkinlik, iştahsızlık ve hipoasidite)
    >30 gr Melek otu kökü
    >20 gr Kimyon tohumu
    >20 gr Kantaron otu
    >20 gr Çentiyan kökü
    >10 gr Kekik otu

    Gökçek Mide çayı (iştahsızlık ve hipoasidite ye karşı);
    >30 gr Nane yaprağı
    >20 gr Çentiyan kökü
    >20 gr Turunç kabuğu
    >10 gr Pelin otu
    >20 gr Kimyon tohumu

    Gökçek Hazımsızlık sindirim salgılarını ve safrayı arttırıcı çay;
    >30 gr Çentiyan kökü
    >30 gr Eğri kökü
    >20 gr Acıyonca yaprağı
    >10 gr Pelin otu
    >10 gr Tarçın kabuğu

    Gökçek İştah çayı (iştahsızlık ve hazımsız.)
    >30 gr Eğri kökü
    >20 gr Nane yaprağı
    >20 gr Kedi otu kökü
    >20 gr Çentiyan kökü
    >10 gr Acıyonca yaprağı

    Gökçek Mide çayı (şişkinlik, iştahsızlık ve hipoasidite);
    >30 gr Çentiyan kökü
    >30 gr Civanperçemi otu
    >20 gr Kantaron otu
    >20 gr Kimyon

    Gökçek İştahsızlık çayı (iştahsızlık, hazımsızlık, tıkanma, şişkinlik);
    >30 gr Melek otu kökü
    >20 gr Çentiyan kökü
    >30 gr Kimyon tohumu
    >20 gr Rezene tohumu

    Gökçek İştahsızlığa karşı çay (hazımsızlık, tıkanma, şişkinlik);
    >30 gr Rezene tohumu
    >30 gr Melek otu kökü
    >20 gr Çentiyan kökü
    >20 gr Kimyon tohumu

    Gökçek İştah çayı (hazımsızlık, tıkanma, şişkinlik ve iştahsızlık);
    >30 gr Zencefil kökü
    >30 gr Çentiyan kökü
    >30 gr Pelin otu
    >10 gr Kimyon tohumu

    Gökçek İştah çayı (hazımsızlık, tıkanma, şişkinlik ve iştahsızlık);
    >40 gr Melek otu kökü
    >30 gr Turunç kabuğu
    >20 gr Çentiyan kökü
    >10 gr Kimyon tohumu

    Gökçek Hazımsızlık tıkanma ve şişkinlikle birlikteyse;
    >30 gr Çentiyan kökü
    >30 gr Rezene tohumu
    >30 gr Kimyon tohumu
    >10 gr Turunç kabuğu

    Homeopati’de: Eylül’den Kasım’a kadar Çentiyan kökü sökülür, yıkanır, ince kıyılır, 20 gr’ı bir şişeye konarak üzerine 80 ml %70’lik Alkol ilave edilerek 4-6 hafta sonra süzülerek Homeopati’de <> ismi ile anılan tentür elde edilir. Bu tentürden günde 3-5 defa 10-15 damla alınır.

    Hastalığın belirtileri (semptom):
    1) Mide ekşimesi, iştahsızlık ve midede ağırlık hissi varsa
    2) Başın büyükmüş gibi hissedilmesi
    3) Ağzının kuru ve boğazda yapışkan balgam olması
    4) Gaitanın çok ve sarımsı olması
    5) Diz kapağında karıncalanma
    6) Yemekten sonra ve temiz havada iyileşme
    Bu gibi hallerde Çentiyan tentürü kullanılır.

    Yantesiri: Hamile kadınların ve fazla mide asidi (hiperasidite) olan kişilerin kullanmaması gerekir.
    Ömer Taşkın
    ÇENTİYAN SETİ SAYESİNDE İŞTAHIM AÇILDI. Çok güzel bir ürün. Herkese tavsiye ederim. Kaç kilo alırsam paylaşacağım.
    KAYNAK

    Çokman
    meraba efendim 1 SET ÇENTİYAN SETİ KULLANDIM FAYDALI. İŞTAHIM AÇILDI daha ne kadar kullanmam gereklidir
    KAYNAK

    ‎Ali Demirtaş
    10 SENEDİR suren KUSMA RAHATSIZLIĞIM gitmedimiz prafsörler calmadimiz kapi kalmadi artik doktorlarin hepsi piskolajik dedi 70 gun resmen delilerin içinde yattim hastalimin bir turlu piskolajik olduna inanmadimdan komşular buyu vardir dedi gitmedim hoca şarlantanlarida kalmadi parayi alasiyakadar buyu aldiktan sonra piskolajik dediler bu hastaliktan iştende cikartildim iyice maddi manevi cokmuş durumdaydim ibrahim hocamla karşilastim dogruyu bulmam 10 senemi aldi bana BAĞIRSAK MANTARI teşisi koydu ÇENTİYAN- D SETİNİ 2 set kullandim 3 cu sette hocam deişiklik yapti hamdolsun HERGÜN KUSUYORDUM SADECE HAFİF BULANTILAR KALDI halsiz ve cok yorgundum calisamiyodum şuan yeni işe basladim tamamen en kisa zamanda noktaliycaz İnşallah Allah hocamızdan razı olsun ümmetin başından eksik olmasın Rabbim sayılarını çoğaltsın inşallah bize vakit ayırdğınız için hakkınızı helal edin hocam saygılar
    KAYNAK

    Hilal Nur Boztepe (Merve Boztepe)
    İyi günler ben İŞTAHSIZLIK ve HALSİZLİK için ÇENTİYAN SETİ - MİNİ kullandım. 20 GÜNDE DÜZENLİ YEMEK YEMEYE BAŞLADIM veHALSİZLİĞİM HEMEN GİTTİ.Kan tahlili yaptırdım ve demir eksikliği çıktığı için Enginar Seti - S'ye başlamak istiyorum.Onun sonucunu da yazarım buraya
    KAYNAK

    Halil Güneş
    İyi günler, ben İŞTAHSIZLIK ve HALSİZLİK için CENTİYAN SETİ kullanmaya başladım 20 günde düzenli yemek yemeye başladım ve halsizliğim gitti. Kanım düşüktü hemen kan tahlili yaptırdım değerlerim normale dönmüş. Allah sizden razı olsun hocam.
    KAYNAK

    hayal_asf
    CENTİYAN SETİ kullandım kullanma sebebim İŞTAH AÇMASI içindir iştahım yoktu. Kullandım şükür faydasını gördüm. FO-Tİ ürününü RU5 SETİ ile birlikte şuan hala kullanıyorum saç sorunum için rabbime şükürler olsun SAÇLARIMDA CANLANMA OLDU. GEVEN KAPSÜL ürününü ise HÜCRE YENİLEME diye aldım kullandım şunu gördüm ki yüz hattımda CİLDİMDE RENK AÇILMASI oldu güzelleştirdi etkisi olduğunu fark ettim. HAMAMELİS KAPSÜL ürününü SEDEF rahatsılığım için almıştım kullandığım süre içerisinde KAŞINTILARIMDAN KURTULDUM. Bu ürünlerde emeği geçen herkese teşekkürler.
    KAYNAK

    a.hmetcn1
    Çocukluğumdan beri çok ince kemikli ve zayıf biriyim. Annem sizin videolarınızı izlemiş bana CENTİYAN SETİ aldı 2,5 aydır kullanıyorum 4,5 KİLO ALMIŞIM ne kadar teşekkür etsem az size.
    KAYNAK

    01fatma0101
    CENTİYAN SETİ kullandım oğlum yemek yemiyordu 15 yaşında kilosu 49 du. Ürünleri kullandıktan sonra hem BOYU UZADI hem KİLOSU 70 OLDU görenler 20 yaşında zannediyor teşekkürler İbrahim Gökçek hocam.
    KAYNAK

    tutulin1
    CENTİYAN SETİNİ kızım için aldım gerçekten İŞTAHI AÇILDI inanamıyorum bu yüzden çok sevinçliğim. GEVEN KAPSÜLÜ sürekli kullanıyorum zaten DÖKÜLEN SAÇLARIMI YERİNE GETİRDİ. Cildim çok parlaklaştı, pürüzsüz oldu. Size ne kadar teşekkür etsek az hocam Allah başarılarınızı daim etsin. Sağlığınızı daim etisin Türiye'nin gururusunuz.
    KAYNAK

    Osman Korkmaz
    Yaklaşık 4 ay boyunca CENTİYAN SETİ kullandırdık oğluma. Çok ZAYIFTI, İŞTAHI YOKTU şimdi iştahı maşallah iyi kilo da aldı Allah sizden razı olsun. Hocam bu ürünleri bizlere ürettiğiniz için hemen hemen bütün ürünlerimizi çevreme tavsiye ediyorum. Maşallah hepsi binbir derde deva.
    KAYNAK

    serinkayanuran
    Hayırlı günler kardeşimin iştahı yoktu. Doktora götürdük aşırı derecede zayıflamıştı hiçbir çare bulamayınca CENTİYAN SETİ kullandı İŞTAHI AÇILDI ve KİLO ALMAYA BAŞLADI kendine geldi.
    KAYNAK

    mugebora_elif_naz
    CENTİYAN SETİ çok etkili bir ürün kızımın hiç İŞTAHI YOKTU İbrahim hocadan CENTİYAN SETİ aldık daha bir ay olmadan etkisini göstermeye başladı. İŞTAHI AÇILDI hatta bir kilo da aldı teşekkür ederiz.
    KAYNAK

    saglik.bilgisi_
    Merhaba CENTİYAN SETİ gerçekten çok etkili bir ürün. Kızımın hiç İŞTAHI YOKTU vitaminler kullandık hiç fayda etmedi. Hocamız sayesinde CENTİYAN SETİ ile tanıştık ve çok memnun kaldık iyi ki varsınız çok teşekkürler.
    KAYNAK

    cagdassanli
    Hayırlı günler 7 yıldır BULANTI, YANMA, GEĞİRME gibi MİDE RAHATSIZLIKLARIM vardı. Doğru düzgün beslenemiyordum. 3 ay boyunca CENTİYAN SETİ kullandım şikayetlerim geçti. İŞTAHIM AÇILDI yıllar sonra ilk kez KİLO ALMAYA BAŞLADIM her şey için çok teşekkür ederim.
    KAYNAK

    Nur Vesile
    40 kilolarda çok zayıftım KİLO ALAMIYORDUM. Ailem zayıflık sorunlarından dolayı hastaneye yatmam konusunda baskı yapıyordu. Abim İbrahim hoca ile görüşmüş ve CENTİYAN SETİ almış 3 aydır kullanıyorum 40 KİLODAN 55 KİLOYA ÇIKTIM. Halsizliğim, yorgunluğum ortadan kalktı. Şu an her işimi yapabiliyorum. İbrahim hocadan Allah razı olsun.
    KAYNAK

    Adnan Avcı
    ÇENTİYAN SETİ kullanıyorum İŞTAHSIZLIK ve KİLO ALMAMDA etkisini gösterdi. Çok Teşekkür ederim hocam
    KAYNAK

    Metin Kara
    İyi günler ben İŞTAHSIZLIK ve HALSİZLİK için ÇENTİYAN SETİ MİNİ kullandım. 20 günde DÜZENLİ YEMEK YEMEYE BAŞLADIM ve HALSİZLİĞİM GEÇTİ.
    KAYNAK

    Aslı Doğan
    İyi günler ben İŞTAHSIZLIK ve HALSİZLİK için CENTİYAN SETİ kullandım. 20 günde düzenli yemek yemeye başladım ve halsizliğim geçti.
    KAYNAK

    Recep Cetin
    İyi günler ben İŞTAHSIZLIK ve HALSİZLİK için CENTİYAN SETİ kullandım.Birkaç gün içinde düzenli yemek yemeye başladım ve halsizliğim geçti
    KAYNAK
    Konu ozgurcay tarafından (https://bitkiara.com/vb5/member/18435-ozgurcay Saat 10 August 2023, 10:34 ) değiştirilmiştir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    CENTİYAN, Gentian

    Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 03 December 2020, 10:01 ) değiştirilmiştir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      ÇENTİYAN İle Kilo Almak Ve İştahsızlık


      Sarı Gentian Kökü Özü, Periferik Kan Mononükleer Hücrelerinde Konsantrasyona ve Zamana Bağlı Tepkiyi Teşvik Ediyor
      Ana Valenta Šobot , 1 Dunja Drakulić , 1 Gordana Joksić , 1 Jadranka Miletić Vukajlović , 1 Jasmina Savić , 1 Jelena Potočnik , 1 ve Jelena Filipović Tričković 1, *
      Öz
      Geleneksel tıpta yaygın olarak kullanılan tıbbi bir bitki olan sarı centiyana ( Gentiana lutea L.), faydalıdan toksik olana kadar birçok biyolojik etki gösterir. Şimdiye kadar pek çok umut verici uygulama bildirildiğinden amacımız, potansiyel konsantrasyona ve zamana bağlı sitotoksik ve genotoksik etkilerini in vitro olarak değerlendirmekti.. Bu amaçla, oksidatif stres parametreleri [pro/antioksidan dengesi (PAB) ve lipid peroksidasyonu], DNA üzerindeki etkilerini belirlemek için insan periferik kan mononükleer hücrelerini 0,5, 1 ve 2 mg/mL sarı centiyana kökü ekstresine (YGRE) maruz bıraktık. hasar (alkalin kuyruklu yıldız tahlili ve kromozom sapmaları) ve hücre canlılığı (tripan mavisi dışlama testi). Artan konsantrasyonlar ve tedavi süresi ile hücre canlılığı azaldı. Yalnızca en düşük YGRE konsantrasyonu (0.5 mg/mL) oksidatif stresi artırdı, ancak küçük DNA hasarı ve sitotoksisite üretti. Daha yüksek konsantrasyonlarda redoks parametreleri kontrol değerlerine yakın değerlere döndü. Kuyruklu yıldız kuyruğundaki kromozom sapmalarının yüzdesi ve DNA yüzdesi, 48 saat sonra artan YGRE konsantrasyonu ile arttı ve 72 saatlik tedaviden sonra azaldı. Bu, 2 mg/mL'lik en yüksek YGRE konsantrasyonu ile 72 saatlik tedaviden sonra kromozomal radyal figürlerin oluşumuyla kanıtlanan DNA onarım mekanizmasının (homolog rekombinasyon) aktivasyonuna işaret eder. Sonuçlarımız, YGRE'nin sitotoksik ve genotoksik etkilerin indüklenmesine rağmen, oksidatif ve DNA lezyonlarına karşı hücre onarım mekanizmalarını aktive ettiğini ve yüksek oranda hasar görmüş hücrelerde hücre ölümünü indüklediğini göstermektedir. Bu nedenle, sarı centiyana'nın daha uzun süre maruz kaldıktan sonra gözlenen koruyucu etkileri, aktive edilmiş onarım ve onarılamaz hasarlı hücrelerin çıkarılmasının bir sonucu olabilir. oksidatif ve DNA lezyonlarına karşı koyan hücre onarım mekanizmalarını aktive eder ve yüksek oranda hasar görmüş hücrelerde hücre ölümüne neden olur. Bu nedenle, sarı centiyana'nın daha uzun süre maruz kaldıktan sonra gözlenen koruyucu etkileri, aktive edilmiş onarım ve onarılamaz hasara sahip hücrelerin çıkarılmasının bir sonucu olabilir. oksidatif ve DNA lezyonlarına karşı koyan ve yüksek oranda hasar görmüş hücrelerde hücre ölümünü indükleyen hücre onarım mekanizmalarını aktive eder. Bu nedenle, sarı centiyana'nın daha uzun süre maruz kaldıktan sonra gözlenen koruyucu etkileri, aktive edilmiş onarım ve onarılamaz hasarlı hücrelerin çıkarılmasının bir sonucu olabilir.

      Anahtar kelimeler: sitotoksisite, genotoksisite, Gentiana lutea L., homolog rekombinasyon, redoks parametreleri
      Sarı centiyana ( Gentiana lutea L.) , Avrupa, Güneydoğu Asya ve Kuzey Amerika'nın dağlık bölgelerinde yaygın olan Gentianaceae familyasına aittir ( 1 ). Geleneksel tıpta neredeyse tüm bitki parçaları (yapraklar, çiçekler, rizomlar, kökler) veya bütün bitkiler kullanılmaktadır. Kök, binlerce yıldır gastrointestinal bozuklukları hafifletmek için kullanılmıştır. Ayrıca safra kesesi ve karaciğer fonksiyonlarını desteklemek ve hazımsızlık, iştahsızlık, ateş, boğaz ağrısı ve romatizmal ağrıları tedavi etmek için kullanılır ( 2 ). Özellikle triterpenoidler, amarogentin ve gentiopicrosid varlığından dolayı acı bir tada sahiptir. Özü, ksantonlar, flavonoidler ve iridoidler gibi birçok başka biyoaktif bileşik içerir ( 1 , 3bazıları yararlı anti-inflamatuar, antioksidan, radyoprotektif, immünomodülatör ve antimikrobiyal etkiler sergiler ( 2 , 4 , 5 , 6 , 7 ). Bazı raporlar, kök ekstresinin obeziteyi önleme ve tedavi etme, insülin direncini ve tip 2 diyabeti önleme ve ateroskleroz dahil kardiyovasküler komplikasyonları azaltma potansiyeline sahip olduğunu öne sürüyor ( 8 , 9 , 10 ).

      Bu nedenle, sarı centiyana ekstraktının son yıllarda çok sayıda farmakolojik araştırmaya konu olması pek şaşırtıcı değildir. Bununla birlikte, bazıları ham özütün oksidatif ve genotoksik hasara neden olabileceğini, hücre proliferasyonunu bozabileceğini ve hücre ölümünü tetikleyebileceğini bildirmiştir ( 11 , 12 , 13 ). Sitotoksik etkileri, kötü huylu hücre hatlarına karşı da gösterilmiştir, bu da sarı centiyana özütünün antikanser tedavisi için bir potansiyele sahip olduğunu düşündürmektedir ( 14 , 15 ).

      Sarı kantaron bitkisinin çoklu biyolojik etkileri, yaygın geleneksel kullanımı ve yüksek uygulama potansiyeli göz önüne alındığında, sitotoksisitesinin ve genotoksisitesinin değerlendirilmesi esastır.

      Bu çalışmanın amacı , farklı konsantrasyonlarda uygulanan sarı centiyana kök ekstraktının (YGRE) redoks parametreleri (pro/antioksidan dengesi ve lipid peroksidasyonu), DNA hasarı ve insan periferik kan mononükleer hücrelerinin 48 ve sonrasında hayatta kalması üzerine in vitro etkilerini değerlendirmektir . 72 saat tedavi.

      Git: Malzemeler ve yöntemler
      Sarı centiyana kökü ekstresi (YGRE) hazırlığı
      Sarı centiyana kökü (seri numarası 03970219) Tıbbi Bitki Araştırma Enstitüsü “Dr Josif Pančić”, Belgrad, Sırbistan'dan satın alındı ​​(CAC/RCP 1-1969, rev.4-2003). Ekstraksiyondan önce kök bir el değirmeni ile öğütüldü. Ekstraksiyon tekniğini optimize etmek ve standardize etmek için, toz, liyofilizat ve çözünmüş liyofilizat gibi ekstrakt hazırlamanın her aşamasından sonra öğütülmüş partiküller görüntülendi.Şekil 1), enerji dağılımlı spektroskoplu (EDS) (FEI SCIOS 2, Thermo Fisher Scientific FEI Company, Tokyo, Japonya) alan emisyon taramalı elektron mikroskobu (FESEM) ile 350x büyütmede ve boyutları SemAfore 5.2 yazılımıyla (Insinööritoimisto J. Rimppi) belirlendi. Oy, Ojakkala, Finlandiya).

      Şekil 1
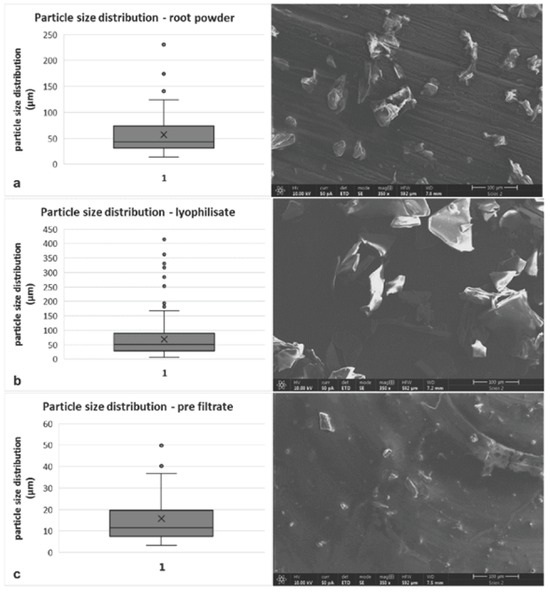
      (a) sarı centiyana kökü tozunda dağılmış parçacıkların parçacık boyutu dağılımı; (b) liyofilizat; ve (c) çözünmüş liyofilizat (ön filtrat). Ölçek çubuğu – 100 μm

      Elde edilen sulu ekstrakt 25 mL akrilik haznelere yerleştirildi, -18 °C'de dondurucuya aktarıldı ve 24 saat donmaya bırakıldı. Önceden dondurulmuş süpernatan daha sonra 48 saat boyunca 400 Pa vakum basıncı altında vakumla dondurularak kurutuldu.

      Çözülmeden önce, liyofilize toz 4 °C'de bir desikatörde tutuldu ve ardından 50 mg/mL konsantrasyonu elde etmek için %50 etanol içinde çözüldü. Partikül boyutu ölçümleri, liyofilize partikül agregatlarının çözünür bileşiklerden oluştuğunu gösterdi. Çözünmüş liyofilizat, kalan çözünmeyen partikülleri elimine etmek ve özüt çözeltisini sterilize etmek için 0.2 um gözenek çaplı bir Minisart ® filtresinden (Sartorius, Göttingen, Almanya) süzüldü . Süzüntü, özütteki sekoiridoidlerin konsantrasyonunu belirlemek içindi. Hücre kültürlerindeki nihai özüt konsantrasyonları 0,5, 1 ve 2 mg/mL idi.

      Ultra performanslı sıvı kromatografisi (UPLC)
      YGRE bileşenlerinin kromatografik ayrımları, bir fotodiyot dizisi (PDA) dedektörü ve bir LUNA 3u, C18( 2 ), 3 µm, 100 mm x 2 mm Phenomenex kolonu ile ACQUITY UPLC sistemi (Malvern Panalytical Ltd, Malvern, UK) ile yapıldı. sabit faz (Phenomenex, Torrance, CA, ABD). Tüm analizler gradyan koşulu altında yapıldı (tablo 1), 0,3 mL/dakika sabit akış hızında solvent A (su içinde ağırlıkça %0,1 HCOOH) ve solvent B'den (metanol içinde ağırlıkça %0,1 HCOOH) oluşan bir mobil faz ile. Otomatik örnekleyici 4 °C'de tutuldu. 3D kromatogramlar 210-450 nm dalga boyu aralığında kaydedildi. Çalışma süresi 6 dakika ve enjeksiyon hacmi 3.5 μL idi.

      Tablo 1


      UPLC ayrımı için kullanılan gradyan koşulu ayrıntıları.
      0 → 2 10 → 28
      2 → 3.5 28 → 30
      3.5 → 5 30 → 55
      5 → 5.1 55 → 10
      5.1 → 6 10 →
      İnsan periferik kan mononükleer hücrelerinin izolasyonu ve ekimi
      20 ila 40 yaşları arasındaki üç sağlıklı donörden Li-heparin vakumlu kaplarda (2 x 10 mL) periferik kan örnekleri toplandı. Tüm denekler bilgilendirilmiş onam imzaladı ve çalışma, Vinča Nükleer Bilimler Enstitüsü - Sırbistan Cumhuriyeti Ulusal Enstitüsü Etik Kurulu tarafından onaylandı.

      Periferik kan mononükleer hücreleri (PBMC), Ficoll™ ortamında (Thermo Fisher Scientific, Waltham, MA, ABD) izole edildi ve bir konsantrasyonda %1 penisilin-streptomisin ve %10 fetal sığır serumu (FBS) ile takviye edilmiş RPMI 1640 ortamında yeniden süspanse edildi. 1 x 10 6 canlı hücre / ml. Elde edilen hücre kültürleri daha sonra kök ekstresi ile 37 °C'de 48 ve 72 saat inkübe edildi.

      Trypan mavi dışlama testi
      Tripan mavisi, başka bir yerde açıklandığı gibi hücre canlılığını değerlendirmek için kullanıldı ( 17 ). Kısaca, eşit hacimlerde PBMC süspansiyonu ve %0.4 Tripan mavisi boyası karıştırıldı ve bir hemositometreye (Cambridge Instruments Inc., Buffalo, NY, ABD) uygulandı. Canlı, boyanmamış hücreler, 16 karelik dört set halinde sayıldı. ML başına canlı hücre sayımı 10 ile çarpılarak, her bir kümenin ortalama temsil 4 ve boya seyreltme düzeltme faktörü olarak 2 ile.

      Kromozom sapmaları tahlili
      Hücre kültürlerini oluşturmak için, %1 penisilin-streptomisin, %10 FBS ve fitohemagglutinin ile desteklenmiş RPMI 1640 ortamına 0,5 mL heparinize tam kan eklendi ve 0,5, 1 ve 2 mg/mL'lik nihai konsantrasyonlar elde etmek için YGRE ile işlendi. Hücre kültürü için kullanılan tüm kimyasallar Capricorn Scientific GmbH'den (Ebsdorfergrund, Almanya) satın alındı. Kültür başlangıcından 48 ve 72 saat sonra hasat yapılmıştır. Hasattan üç saat önce, metafaz hücrelerini toplamak için kolşisin (Sigma-Aldrich Co., St. Louis, MO, ABD) ilave edildi (2.5 ug/mL'lik nihai konsantrasyonda). Hücre kültürleri daha sonra santrifüjlendi ve hipotonik solüsyonla (%0.56 KCl) 37°C'de 20 dakika süreyle işlendi. Süpernatant çıkarıldı ve hücreler Carnoy's fiksatif solüsyonunda (3:1 metanol-glasiyal asetik asit oranı) fikse edildi, fiksatifte üç kez yıkandı, ve temiz mikroskobik lamlara pipetlendi. Slaytlar artan konsantrasyonlarda etanol (%70, 95 ve %100) ile dehidre edildi, 4',6'-diamidino-2-fenilindol (DAPI) içeren Vectashield solüsyonu (Vector Laboratories Ltd, Peterborough, UK) ile boyandı ve analiz edildi ISIS görüntüleme yazılım paketi (MetaSystems Hard & Software GmbH, Altlussheim, Almanya) ile bir Zeiss-Axioimager A1 mikroskobu (Carl Zeiss, Jena, Almanya) altında. Örnek başına en az 200 tam metafaz yayılımı analiz edildi, oysa puanlama kriterleri karyotipin belirlenmesini ve kromozom hasarı göstergelerini (kromozom kırılmaları, disentrik ve halka kromozomları, asentrik parçalar ve radyal şekiller) içeriyordu ( 6′- diamidino-2-fenilindol (DAPI) içeren Vectashield solüsyonu (Vector Laboratories Ltd, Peterborough, İngiltere) ve ISIS görüntüleme yazılım paketi ile bir Zeiss-Axioimager A1 mikroskobu (Carl Zeiss, Jena, Almanya) altında analiz edildi ( MetaSystems Hard & Software GmbH, Altlussheim, Almanya). Numune başına en az 200 tam metafaz yayılımı analiz edildi, oysa puanlama kriterleri karyotipin belirlenmesini ve kromozom hasarı göstergelerini (kromozom kırılmaları, disentrik ve halka kromozomlar, asentrik parçalar ve radyal şekiller) içeriyordu ( 6′- diamidino-2-fenilindol (DAPI) içeren Vectashield solüsyonu (Vector Laboratories Ltd, Peterborough, İngiltere) ve ISIS görüntüleme yazılım paketi ile Zeiss-Axioimager A1 mikroskobu (Carl Zeiss, Jena, Almanya) altında analiz edildi ( MetaSystems Hard & Software GmbH, Altlussheim, Almanya). Numune başına en az 200 tam metafaz yayılımı analiz edildi, oysa puanlama kriterleri karyotipin belirlenmesini ve kromozom hasarı göstergelerini (kromozom kırılmaları, disentrik ve halka kromozomlar, asentrik parçalar ve radyal şekiller) içeriyordu (18 , 19 ).

      Alkali kuyruklu yıldız tahlili
      Alkalin kuyruklu yıldız tahlili, Singh ve diğerleri tarafından açıklanan yöntemin bir uyarlamasıydı. ( 20). Kısaca, 48 saat boyunca işleme tabi tutulan PBMC, fosfat tamponlu tuzlu su (PBS) içinde yıkandı, 37 °C'de PBS içinde %1 düşük erime noktalı agaroz (LMPA) içinde yeniden süspanse edildi ve %1 normal erime ince bir tabaka ile önceden kaplanmış mikroskobik slaytlar üzerine yerleştirildi. nokta agaroz (NMPA). Slaytların 4 °C'de 10 dakika oturmasına izin verildi ve ardından 1 saat 4 °C'de bir lizis çözeltisine daldırıldı. Elektroforez, aynı sıcaklık ve voltajda 25 V (1 V/cm, 300 mA) 20 dakika süreyle gerçekleştirildi. Slaytlar daha sonra üç kez 0.4 mol/L Tris-HCl, pH 7.5, 4 °C'de yıkandı, havayla kurutuldu ve DAPI içeren bir Vectashield solüsyonu ile zıt boyandı. Otomatik Metafer CometScan yazılımı (MetaSystems) ile bir Zeiss-Axioimager A2 mikroskobu altında her slayt için en az 300 hücre değerlendirildi. Sonuçlar kuyruklu yıldız kuyruğundaki DNA yüzdesi (% DNA) olarak sunulur.

      Prooksidan-antioksidan dengesi (PAB) testi
      Test, Alamdari ve diğerleri tarafından tarif edildiği gibi yapıldı. ( 21 ), küçük değişikliklerle. Bu yöntem, aynı numunede iki eşzamanlı oksidasyon-redüksiyon reaksiyonuna dayanmaktadır. Yaban turpu peroksidaz (HRP) tarafından katalize edilen ilk reaksiyonda, kromojen 3,3',5,5'-tetrametilbenzidin (TMB) renkli bir katyona oksitlenir. İkinci reaksiyonda, bu renkli katyon, antioksidanlar tarafından renksiz bir bileşiğe indirgenir.

      Standart çözelti 1 mmol farklı oranlarda (% 0-100) / L karıştırılmasıyla hazırlandı 2 O 2 10 mmol / L'lik NaOH içinde 6 mmol / L ürik asit. TMB katyon çözeltisi hazırlamak için 0.1 mL TMB/DMSO (6 mg/mL), 5 mL asetat tamponu (0.05 mmol/L, pH 4.5) ve 17.5 μL taze yapılmış kloramin T (100 mmol/L) karışımı hazırlandı. karıştırıldı, 37 ºC'de 1 saat çalkalandı ve karanlık bir yerde inkübe edildi. Daha sonra bu karışıma 2.5 U enzim çözeltisi HRP ilave edildi. TMB solüsyonu II, 0.1 mL TMB/DMSO (6 mg/mL) ve 5 mL asetat tamponundan (0.05 mol/L, pH 5.6) yapılmıştır.

      Reaksiyon plakasının her bir kuyucuğunda, 10 μL numune/standart/boş, 0.5 mL TMB katyonundan taze yapılmış 180 μL çalışma solüsyonu ve karanlıkta oda sıcaklığında 6 dakika karıştırılan 5 mL TMB solüsyon II ile karıştırıldı. . Daha sonra plak karanlık bir yerde 37 °C'de 12 dakika inkübe edildi. Her bir kuyucuğa 40 μL 2 mol/L HCl eklenerek reaksiyon durduruldu.

      Bu paralel reaksiyonlar arasındaki fark, absorbans mikroplaka okuyucu Sunrise (Tecan Group Ltd, Männedorf, İsviçre) üzerinde 570 nm'lik bir referans dalga boyu ile 450 nm dalga boyunda optik yoğunluk (OD) olarak ölçülmüştür. PAB değerleri, standart çözeltideki hidrojen peroksit yüzdesini temsil eden standart eğriden hesaplandı ve keyfi Hamidi-Koliakos (HK) birimlerinde ifade edildi.

      Lipid peroksidasyon ürünü (LPP) tahlili
      Bu çalışmada kullanılan lipid peroksidasyon ürünü (LPP) tahlili, kromojen N -metil-2-fenilindolün lipit peroksidasyon ürünleri, yani malondialdehit (MDA) ve 4-hidroksialkenaller (HNE) ile reaksiyonuna dayanmaktadır ( 22 , 23 ).

      İşlemden sonra hücreler yıkandı ve donma-çözülme döngülerinde %0.9 NaCl içinde parçalandı. Protein tayini için numunelerin bir kısmı kullanıldı. Reaksiyon karışımı 140 μL numune/standart/boş, 10 mmol/L nihai konsantrasyona kadar asetonitril/metanol (3:1) içinde seyreltilmiş 455 μL reaktif ve 34 μmol/L Fe( III). Mikrosantrifüj tüplerine eklendi, vortekslendi ve 45 °C'de 60 dakika inkübe edildi. Berrak bir süpernatan elde etmek için numuneler 15000 x g'de 10 dakika santrifüjlendi .

      Bu reaksiyonun ürünü, OD değeri Sunrise absorbans mikroplaka okuyucusu (Tecan) üzerinde 586 nm'de ölçülen stabil bir kromofordur. Değerler, standart bir 1,1,3,3-tetrametoksipropan eğrisi kullanılarak mg protein başına nmol LPP olarak sunulur.

      istatistiksel analiz
      Tüm deneyler iki kopya halinde yapıldı ve üç kez tekrarlandı. Sonuçlar ortalama ± standart hata (SE) olarak sunulmuştur. İstatistiksel analiz için ANOVA testi ve Pearson korelasyon katsayısı kullanıldı. Anlamlılık düzeyi p<0.05 olarak ayarlandı. Tüm istatistiksel analizler Windows için SPSS 10'da (IBM, Armonk, NY, ABD) çalıştırıldı.

      Sonuçlar
      Enerji dağılımlı spektroskopisi (EDS) ile Alan Emisyon Taramalı Elektron Mikroskobu (FESEM) ile sarı centiyana kök ekstresi (YGRE) partikül boyutlarının karakterizasyonu


      FESEM fotomikrografının analizi, dağılmış kök tozundaki partikül boyutunun 53.9±2.95 μm olduğunu gösterdi (Şekil 1 a). Filtrasyon ve liyofilizasyondan sonra, partiküller laminer veya plaka benzeri bir yapı sergiledi: daha küçük partiküller, ortalama boyutu 68,4±3,6 um olan agregalar oluşturdu (Şekil 1 b). Agregalar çoğunlukla çözünür bileşiklerden oluşuyordu, çünkü %50 etanolde çözünen liyofilizatta gözlenen partiküller (50 mg/mL konsantrasyon) çok daha küçük bir boyuta sahipti – 15.8±1.3 µm (Şekil 1 c).

      PDA dedektörlü ultra performanslı sıvı kromatografisi (UPLC)
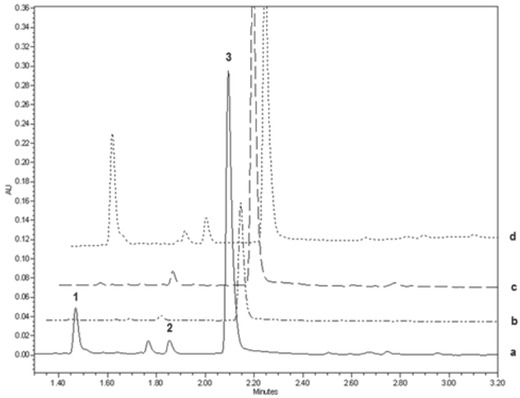
      Kromatogramdaki en yoğun tepe noktalarından bazılarını belirlemek için seçilen bileşiklerin analitik standartları kullanıldı. Ayrıntılı veriler, Valenta Šobot ve diğerleri tarafından hazırlanan raporda sunulmaktadır. ( 24 ).şekil 2 3D kromatogramlardan üç dalga boyunda dışa aktarılan YGRE etanolik çözeltisinin UPLC kromatogramlarını gösterir ve tedavi sırasında yüksek bir gentiopikrosid içeriği ve diğer bileşiklerin yüksek stabilitesini ortaya çıkarır.

      şekil 2
      254 nm'de dışa aktarılan etanol solüsyonunda sarı centiyana kök ekstraktının UPLC kromatogramları (a); 300 nm (b); 270 nm (c); ve 240 nm (d). 1 – loganik asit; 2 – swertiamarin; 3 – örtüşen gentiopikrosid ve sweroside pikleri

      Hücre canlılığı
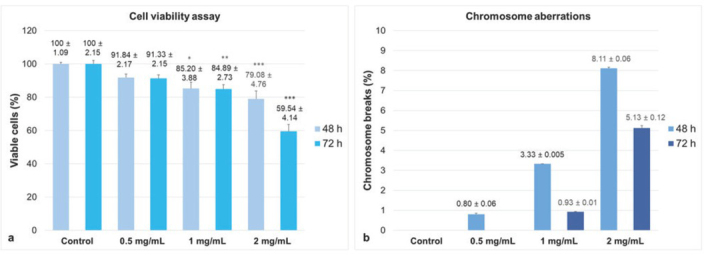
      Şekil 3ahücre canlılığı testinin sonuçlarını gösterir. Tüm tedaviler hücre canlılığını hafiften (0,5 mg/mL için %91,84, 48 saat tedavi) daha belirgine (2 mg/mL için %59,54, 72 saat tedavi, p<0,001) değişen bir dereceye kadar azalttı. Her iki maruz kalma süresinde de artan YGRE konsantrasyonu ile hücre canlılığı azalır. Hem 48 (sırasıyla p<0.05 ve p<0.01) hem de 72 saatlik tedavi (sırasıyla p<0.01 ve p<0.001) için 1 ve 2 mg/mL'lik konsantrasyonlarda istatistiksel olarak anlamlı azalma gözlemlendi,Şekil 3a).

      Figür 3
      48 ve 72 saatlik tedaviden sonra farklı sarı centiyana kökü ekstresi konsantrasyonlarında kontrol yüzdesi (a) ve kromozom kırılmalarının yüzdesi (b) olarak ifade edilen hücre canlılığı. *p<0,05, **p<0,01, ***p<0,001

      Kromozom sapmalarının insidansı
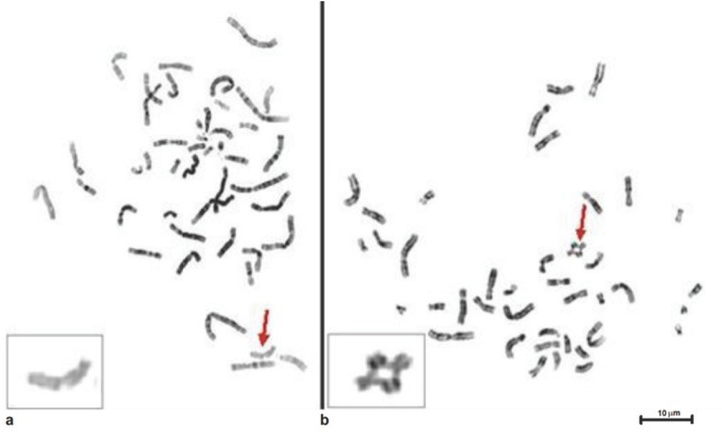
      Kromozom sapmaları testinin sonuçları, 48 saatlik tedaviden sonra YGRE konsantrasyonunun artmasıyla kromozomal kırılma insidansının %0.8'den (0.5 mg/mL) %8.11'e (2 mg/mL) arttığını göstermiştir (Figür 3b). Uzun süreli inkübasyonun DNA hasarı onarımı üzerindeki etkisini değerlendirmek için 72 saat sonra kromozom sapmaları da analiz edildi. 1 ve 2 mg/mL (sırasıyla %0,93 ve %5,1) konsantrasyonlar için 72 saatlik tedaviden sonra mola sıklığının artma eğilimi fark edildi, ancak molaların yüzdesi 48 saatlik tedaviye kıyasla azaldı (Figür 3). 0.5 mg/mL'lik konsantrasyon 72 saat sonra kromozomal kırılmalara neden olmadı.Şekil 4 çift ​​iplikli kopma (DSB) onarımının göstergeleri olan 2 mg/mL YGRE'de homolog kromozomlar arasındaki radyal rakamların görünümünü gösterir.

      Şekil 4
      Metafazın fotomikrografisi, 2 mg/mL sarı centiyana kökü ekstresi ile 72 saatlik tedaviden sonra yayılır. Oklar, kromatid kırılmayı (a) ve iki homolog kromozom (17q) arasındaki radyal şekli gösterir, homolog rekombinasyonun bir göstergesidir - şablona bağlı DNA DSB onarımının bir mekanizması (b)

      Beklendiği gibi, kromozom kırılmalarının yüzdesi, her iki tedavi süresi için canlılık testi ile ters orantılıdır (48 saatlik tedavi için p<0.01, r=-0.67 ve 72 saatlik tedavi için p<0.01, r=-0.89).

      kuyruklu yıldız tahlili
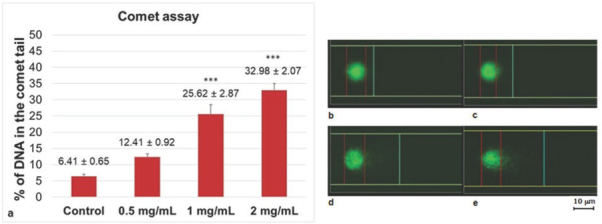
      Test edilen tüm YGRE konsantrasyonları, 48 saatlik tedaviden sonra kontrole kıyasla kuyruklu yıldız kuyruğundaki DNA yüzdesini arttırdı ve fark, iki daha yüksek konsantrasyon için önemliydi (p<0.001) (Şekil 5). Yine beklendiği gibi, kuyruklu yıldız kuyruğundaki DNA parametre yüzdesi hücre canlılığı ile ters orantılıydı (p<0.01, r=-0.797).

      Şekil 5
      Kuyruklu yıldız tahlili ile oluşturulan YGRE kaynaklı DNA hasarının grafiği (a) ve fotomikrografisi (be). b - kontrol; c – 0,5 mg/mL; d – 1 mg/mL; e – 2 mg/mL; YGRE - sarı centiyana kökü ekstresi. Ölçek çubuğu – 10 μm. ***p<0,001

      Oksidatif stres
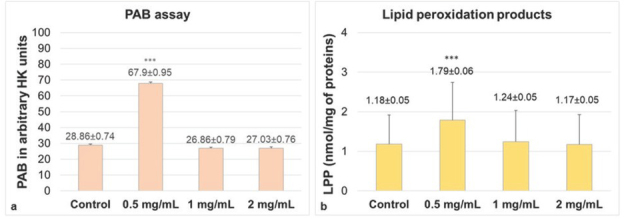
      PAB ve LPP seviyeleri en yüksekti (sırasıyla 67.9 keyfi HK birimi ve 1.79 nmol/mg protein) ve 0.5 mg/mL'lik en düşük konsantrasyon için istatistiksel olarak anlamlıydı (p<0.001), daha yüksekte kontrol seviyelerine düştüler. konsantrasyonlar (Şekil 6). PAB ve LPP pozitif korelasyon gösterdi (p<0.01, r=0.894).

      Şekil 6
      Artan konsantrasyonlarda sarı centiyana kökü ekstresi ile muameleden sonra, keyfi HK birimleri (a) olarak sunulan PAB seviyeleri ve nmol/mg protein (b) olarak ifade edilen LPP seviyeleri. ***p<0,001

      Tartışma
      Sonuçlarımız, artan YGRE konsantrasyonlarına maruz kaldıktan sonra PBMC'nin hayatta kalmasında konsantrasyona ve zamana bağlı azalmayı göstermektedir. İnsan lenfositlerinin , Gentiana asclepiadea ve Gentiana kurroo Royle gibi benzer bileşenlere sahip olan Gentianaceae familyasının diğer bitkilerinden elde edilen özlerle muamele edilmesinden sonra da benzer sonuçlar bildirilmiştir ( 25 , 26 ). YGRE'nin konsantrasyona bağlı sitotoksik etkileri aynı şekilde servikal, meme, prostat ve kolon kanseri gibi kanser hücre dizilerinde de gözlendi ( 14 , 15). Bununla birlikte, bu çalışmalarda sitotoksik sonuçlar, büyük olasılıkla kanser hücrelerinin metabolizmasındaki farklılıklar ve terminal olarak farklılaşmış periferik kan T-lenfositleri nedeniyle daha düşük konsantrasyonlarda gözlenmiştir. Kötü huylu ve sağlıklı doku arasında sarı centiyanaya farklı tepki, radyoprotektif etkilerine ilişkin bir çalışmada zaten gözlemlenmiştir ( 7 ).

      Sarı centiyana etkileri hakkındaki çelişkili literatür verileri ışığında, sitotoksisitesinin redoks parametreleri ve DNA hasarı ile ilişkili olup olmadığını görmek istedik ve sadece en düşük YGRE konsantrasyonunun redoks parametrelerini arttırdığını, ancak bunun sadece bir sonuca yol açtığını bulduk. küçük DNA hasarı ve hafif sitotoksisite. On yıllar boyunca birçok çalışma, oksidatif stres ve DNA hasarı arasındaki ilişkiye odaklanarak, reaktif oksijen türleri (ROS) üretimi ile genomik kararsızlığı ve hücre ölümünü tetikleyen DNA değişiklikleri arasındaki güçlü etkileşimi kanıtladı ( 27 , 28 ).). Sonuçlarımız, en düşük YGRE konsantrasyonu ile tedaviden sonra gözlenen pro-oksidan durum ve yüksek lipid peroksidasyon ürünlerinin önemli DNA hasarına yol açmadığını göstermektedir. Buna karşılık, daha yüksek ekstrakt konsantrasyonları, PAB ve LPP seviyelerini sadece biraz azalttı, ancak kuyruklu yıldız kuyruğunda artan DNA yüzdesi ve kromozomal anormalliklerin sıklığı olarak görülen önemli DNA hasarını tetikledi. Bunun nedeni, yalnızca test edilen bileşiğin kritik bir konsantrasyonuna ulaşıldıktan sonra tetiklenen antioksidatif savunma kapasitesi olabilir.

      Kusar ve arkadaşları tarafından kapsamlı bir çalışma. ( 29 ), YGRE'nin DPPH (2,2-difenil-1-pikrilhidrazil) ve süperoksit radikalini temizleyerek, ancak yalnızca 19.0 mg/mL ve 11.1 mg/mL'lik yüksek konsantrasyonlarda güçlü antioksidatif özellikler gösterdiğini gösterdi. Benzer bulgular birkaç çalışma tarafından rapor edildi, ancak bunların tümü ex vivo deneylerde elde edildi ( 4 , 14 , 30 ). Bildirilen süpürücü etki, muhtemelen antioksidan kapasiteye sahip bileşenlerin, yani flavonoidler, ksantonlar ve sekoiridoidlerin daha yüksek miktarından kaynaklanmaktadır ( 31 ). Diğerleri ( 32 , 33 ), in vivo konsantrasyona bağlı antioksidatif aktivite göstermiştir.G. cruciata ve G. asclepiadea özleri, sekoiridoidler swertiamarin, swerosit ve gentiopicrin açısından zengindir.

      Öte yandan, daha düşük ekstrakt konsantrasyonları, artan lipid peroksidasyonuna yol açan diğer bileşenlerin pro-oksidan etkilerini destekleyebilir. Ekstrakt bileşenleri ve bunların bireysel etkileri arasındaki denge, Petrovic ve ark. ( 34 ) bir G. dinarica olduğunu bulanözü, periferik kan lenfositlerinde lipid peroksidasyon ürünlerini azalttı, ancak bu bitkide bulunan aynı polifenol bileşikleri konsantrasyonu ile tedavi zıt sonuçlar verdi. Isoorientin, isoorientin-4′-O-glikozit ve norswertianin-1-O-primveroside antioksidatifken, norswertianin-8-O-primveroside ve gentiacaulein pro-oksidatif etkiler gösterdi. Bu sonuçlar, bitki ekstraktının kümülatif sonucunun, çoğunlukla bileşenleri ve bunların bireysel pro-oksidatif veya antioksidatif etkileri arasındaki dengeye bağlı olduğunu göstermektedir.

      Bununla birlikte, daha yüksek ekstrakt konsantrasyonları önemli DNA hasarını indüklediğinden ve hücresel sağkalımı azalttığından, artan YGRE konsantrasyonlarının, sonuç olarak SOD ve katalaz gibi antioksidan enzimleri ve endojen antioksidan glutatyon (GSH) gibi antioksidan enzimleri aktive eden daha yüksek ROS üretimini tetiklemesi daha olasıdır. Aktive edildikten sonra, hücrelerin bir kısmı, hücre canlılığının azalması ve daha yüksek DNA hasarı ile kanıtlandığı gibi, terminal olarak farklılaşmış hücrelerin onarım kapasitesinin ötesinde hasar görürken, hücreler içinde oksidatif hasarı belirli bir dereceye kadar önleyebilirler. 2 mg/mL YGRE ile tedavi, hücresel canlılığı %78,57'ye düşürdü, kuyruklu yıldız kuyruğunda %6,41'den %32,98'e önemli bir DNA %'si artışına yol açtı ve 48 saatlik tedaviden sonra %8,11 kromozomal kırılma üretti, oysa PAB ve LPP seviyeleri neredeyse kontrol değerlerine düştü.

      Diğer araştırma grupları ayrıca farklı Gentiana ekstraktlarının konsantrasyonlarının genotoksik ve sitotoksik etkilerini bildirmiştir . Örneğin, G. asclepiadea kök ekstresi, vücut ağırlığının 400 mg/kg'ı ile tedavi edilen sıçanlarda kuyruklu yıldız kuyruğu uzunluğunu arttırdı ve insan periferik kan lenfositlerinde doza bağlı olarak kuyruklu yıldız kuyruğu yoğunluğunu arttırdı ( 26 , 33 ). G. dinarica özü, periferik kan lenfositlerinde mikronükleus sıklığını ve apoptozu arttırdı ( 34 ). Siyah ve yeşil çay özütü gibi antioksidan aktiviteleriyle bilinen ve polifenoller açısından zengin birçok bitki özü için benzer sonuçlar bulundu, bu da daha yüksek polifenol konsantrasyonlarının spontan H'ye yol açabileceğini düşündürdü.2 O 2 üretimi, DNA hasarı ve hücre ölümü ( 35 , 36 ). Bu argümana uygun olarak, konsantrasyon, belirli bir bileşiğin veya özütün antioksidan veya pro-oksidan olarak hareket edip etmediğini belirler.

      İlginç bir şekilde, çalışmamızda test edilen tüm konsantrasyonlar için 72 saatlik tedaviden sonra kromozomal kırılma sıklığı daha düşüktü. Bu ve hücre canlılığı bulguları, aberasyonları düzeltilebilecek hücrelerde DNA onarım mekanizmalarının aktive olduğunu, onarılamayacak kadar hasarlı hücrelerin ise öldüğünü göstermektedir. Bu, 72 saatlik YGRE tedavisinden sonra gözlemlenen radyal rakamlarla iyi bir şekilde gösterilmiştir, çünkü bunlar, çift sarmal kopmalarının (DSB'ler) onarımı için spesifik, şablona bağlı önemli bir DNA onarım mekanizması olan homolog rekombinasyonu gösterir. Bu, Patenković ve arkadaşlarının raporuna uygundur. ( 12 ), YGRE ile tedavi edilen Drosophila'da homolog mitotik rekombinasyon sergileyen ( 12). Homolog rekombinasyonun heterozigotluk kaybı nedeniyle olumsuz etkisi olsa da, bu onarım mekanizmasının aktivasyonu oksidatif DNA hasarından kurtulmak için hayati önem taşır ( 12 , 37 , 38 ). Oksidatif DNA hasarı üzerine, ATM, ATR, RAD50 ve MRE11A proteinleri dahil olmak üzere karmaşık protein ağı aktive olur ve etkilenen hücrelerin hayatta kalmasına katkıda bulunan RAD50, RAD51, XRCC2 ve XRCC3 gen ve protein seviyelerinin yükselmesine yol açar ( 28 , 37 , 38 ) ).

      Sonuç
      Çalışmamızın sonuçları, YGRE'nin konsantrasyona ve zamana bağlı sitotoksik ve genotoksik etkiler göstermesine rağmen, oksidatif ve DNA lezyonlarına karşı koyan onarım mekanizmalarını aktive ettiğini ve onarımın ötesinde hasar görmüş hücrelerde hücre ölümünü indüklediğini göstermektedir. DNA fragmantasyonu, hücre ölümündeki önemli artıştan 24 saat önce artan fragmantasyon gözlendiğinden, sarı centiyana'nın sitotoksik etkilerini tahmin etmeye hizmet edebilir. Bu bulgular göz önüne alındığında, sarı centiyana'nın koruyucu etkilerinin, hücre savunmalarının aktivasyonundan ve hücrelerin onarılamayacak şekilde ölmesinden kaynaklandığı görülmektedir. Ancak konsantrasyon, tedavi süresi ve toksik etkiler arasında açık bir ilişki olduğundan ve bu etkilerin hücre düzeyinde gözlemlendiğinden, YGRE'nin sito/genoprotektif potansiyelini daha iyi anlamak için daha fazla çalışmaya ihtiyaç vardır,

      teşekkür
      Bu çalışma, Sırbistan Cumhuriyeti Eğitim, Bilim ve Teknolojik Geliştirme Bakanlığı tarafından mali olarak desteklenmiştir.

      Git: Kısaltmalar listesi
      CA kromozom sapmaları
      DAPI 4',6'- diamidino-2-fenilindol
      DMSO dimetil sülfoksit
      DSB'ler çift ​​iplik kopmaları
      DPPH 2,2-difenil-1-pikrilhidrazil
      EDS enerji dağılımlı spektroskopi
      FESEM alan emisyon taramalı elektron mikroskobu
      GSH glutatyon
      HNE 4-hidroksialkenaller
      İK homolog rekombinasyon
      İHP yabanturpu peroksidaz
      LMPA düşük erime noktalı agaroz
      LPP lipid peroksidasyon ürünleri
      MDA malondialdehit
      NMPA normal erime noktası agaroz
      PAB pro/antioksidan dengesi
      PBMC periferik kan mononükleer hücreleri
      PBS fosfat tamponlu tuzlu su
      ROS Reaktif oksijen türleri
      SOD süperoksit dismutaz
      tüberküloz tripan mavisi
      TMB 3,3',5,5'-tetrametilbenzidin
      UPLC ultra performanslı sıvı kromatografisi
      YGRE sarı centiyana ( Gentiana lutea L.) kök ekstresi
      Git: Dipnotlar
      çıkar çatışması
      Bildirecek yok.

      Git: Referanslar
      1. Pan Y, Zhao YL, Zhang J, Li WY, Wang YZ. Gentiana (Gentianaceae) Chem Biodivers cinsinin fitokimyası ve farmakolojik aktiviteleri . 2016; 13 :107–50. doi: 10.1002/cbdv.201500333. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      2. Mirzaee F, Hosseini A, Jouybari HB, Davoodi A, Azadbakht M. Gentiana türlerinin tıbbi, biyolojik ve fitokimyasal özellikleri. J Gelenek Tamamlayıcı Med. 2017; 7 :400–8. doi: 10.1016/j.jtcme.2016.12.013. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      3. Olennikov DN, Kashchenko NI, Chirikova NK, Tankhaeva LM. Dört Sibirya centilmeninin iridoidleri ve flavonoidleri: kimyasal profil ve mide uyarıcı etki. Moleküller. 2015; 20 (10): 19172–88. doi: 10.3390/moleküller201019172. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      4. Azman NAM, Segovia F, Martínez-Farré X, Gil E, Almajano MP. Gentian lutea kökünün antioksidan aktivitesinin taranması ve su içinde yağ emülsiyonlarında uygulanması. Antioksidanlar (Basel) 2014; 3 :455–71. doi: 10.3390/antiox3020455. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      5. Savikin K, Menković N, Zdunić G, Stević T, Radanović D, Janković T. Gentiana lutea L. ekstraktlarının antimikrobiyal aktivitesi . Z Naturforsch CJ Biosci. 2009; 64 :339-42. doi: 10.1515/znc-2009-5-606. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      6. Seiwerth J, Tasiopoulou G, Hoffmann J, Wölfle U, Schwabe K, Quirin KW, Schempp CM. Gentian kökü, meyan kökü ve söğüt kabuğu ekstresinden oluşan yeni bir topikal bitkisel bileşimin (VEL-091604) anti-inflamatuar etkisi. Bitki Med. 2019; 85 :608–14. doi: 10.1055/a-0835-6806. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      7. Menkovic N, Juranic Z, Stanojkovic T, Raonic-Stevanovic T, Savikin K, Zdunić G, Borojevic N. Gentiana lutea özütü ve mangiferinin radyoprotektif aktivitesi . Fitoter Araş. 2010; 24 :1693–6. doi: 10.1002/ptr.3225. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      8. Joksić G, Filipović Tričković J, Joksić I. Obezite ile ilişkili hastalıkların tedavisi için Gentiana lutea'nın potansiyeli . Curr Ecz. 2019; 25 :2071–6. doi: 10.2174/1381612825666190708215743. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      9. Park E, Lee CG, Kim J, Yeo S, Kim JA, Choi CW, Jeong SY. Gentiana lutea ekstraktının 3T3-L1 preadipositleri ve yüksek yağlı diyete bağlı fare modeli üzerindeki antiobezite etkileri . Moleküller. 2020; 25 (10):2453. doi: 10.3390/moleküller25102453. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      10. Kesavan R, Chandel S, Upadhyay S, Bendre R, Ganugula R, Potunuru UR, Giri h, Sahu G, Kumar PU, Reddy GB, Joksic G, Bera AK, Dixit M.. Gentiana lutea, anti-aterosklerotik etkiler gösterir. endotelyal inflamasyonu ve düz kas hücre göçünü önleme. Nutr Metab Kardiyovasküler Dis. 2016; 26 :293–301. doi: 10.1016/j.numecd.2015.12.016. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      11. Kesavan R, Potunuru UR, Nastasijević B, Avaneesh T, Joksić G, Dixit M. Gentiana lutea kök ekstreleri ile vasküler düz kas hücresi proliferasyonunun inhibisyonu . PLoS Bir. 2013; 8 (4):e61393. doi: 10.1371/journal.pone.0061393. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      12. Patenković A, Stamenković-Radak M, Nikolić D, Marković T, Anđelković M. Gentiana lutea L.'nin Drosophila kanat noktası testinde metil metansülfonat genotoksisitesi üzerindeki sinerjistik etkisi . J Etnofarmakol. 2013; 146 :632–6. doi: 10.1016/j.jep.2013.01.027. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      13. Wani BA, Ramamoorthy D, Oldukça MA, Arumugam N, Qazi AK, Majeed R, Hamid A, Ganie SA, Ganai BA, Anand R, Gupta AP. Gentiana kurroo kök ekstresi ve ana bileşenlerinin LCESI-MS analizi ile mitokondriyal membran potansiyelinin (ΔΨm) kaybı yoluyla insan pankreas MiaPaCa-2 hücrelerinde apoptoz indüksiyonu . Bitkisel ilaç. 2013; 20 :723–33. doi: 10.1016/j.phymed.2013.01.011. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      14. Balijagić J, Janković T, Zdunić G, Bosković J, Savikin K, Godevac D, Stanojković T, Jovancević M, Menković N. Karadağ'ın kuzey bölgelerinde yetişen sarı centiyana yapraklarının kimyasal profili, radikal süpürücü ve sitotoksik aktivitesi Genitaneae luteaefolium . Nat Prod Commun. 2012; 7 :1487–90. PMID: 23285813. [ PubMed ] [ Google Akademik ]
      15. Rodrigues C, Karmali A, Machado J. Gentiana lutea'nın insan karsinom hücre dizileri üzerinde potansiyel sitotoksik etkileri olan özleri : Bir ön çalışma. Eur J Integr Med. 2019; 27 :34–8. doi: 10.1016/j.eujim.2019.02.008. doi. [ CrossRef ] [ Google Akademik ]
      16. Ladeira C. Viegas C, Pinheiro AC, Sabino R, Viegas S, Brandão J, Verissimo C. Halk sağlığında çevresel mikoloji. Amsterdam: Akademik Basın; 2016. Mikotoksinler: genotoksisite çalışmaları ve metodolojileri; s. 343–61. s. doi. [ CrossRef ] [ Google Akademik ]
      17. Strober W. Hücre canlılığının tripan mavisi dışlama testi. Curr Protoc İmmünol. 2015; 111 doi: 10.1002/0471142735.ima03bs111. A3.B.1-A3.B.3. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      18. Ekonomik İşbirliği ve Kalkınma Teşkilatı (OECD) 473 Sayılı Kimyasalların Testi için Kılavuz İlkeler: İn Vitro Memeli Kromozomal Sapma Testi. Paris: OECD; 2016. [ CrossRef ] [ Google Akademik ]
      19. Filipović J, Joksić G, Vujić D, Joksić I, Mrasek K, Weise A, Liehr T. Hastalığın farklı evrelerinde FAD2 hastalarının primer lenfositlerinde Fanconi anemi kırılgan bölgelerinin ilk moleküler sitogenetik karakterizasyonu. Mol Sitogenet. 2016; 9 : 70. doi: 10.1186/s13039-016-0280-6. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      20. Singh NP, McCoy MT, Tice RR, Schneider EL. Tek tek hücrelerde düşük DNA hasarı seviyelerinin nicelleştirilmesi için basit bir teknik. Exp Cell Res. 1988; 175 :184-91. doi: 10.1016/0014-4827(88)90265-0. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      21. Alamdari DH, Paletas K, Pegiou T, Sarigianni M, Befani C, Koliakos G. Tip II diyabet hastalarında antioksidan vitamin uygulamasından önce ve sonra prooksidan-antioksidan dengesinin değerlendirilmesi için yeni bir deney. Klinik Biyokimya. 2007; 40 :248–54. doi: 10.1016/j.clinbiochem.2006.0.017. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      22. Esterbauer h, Schaur RJ, Zollner h. 4-hidroksinonenal, malonaldehit ve ilgili aldehitlerin kimyası ve biyokimyası. Serbest Radic Biol Med. 1991; 11 :81–128. doi: 10.1016/0891-5849(91)90192-6. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      23. Tsikas D. Biyolojik örneklerde malondialdehit (MDA) ve akrabalarını ölçerek lipid peroksidasyonunun değerlendirilmesi: Analitik ve biyolojik zorluklar. Anal Biyokimya. 2017; 524 :13–30. doi: 10.1016/j.ab.2016.10.021. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      24. Valenta Sobot A, Savic J, Filipovic Trickovic J, Drakulic D, Joksic G. Gentiana lutea L. kök ekstresi ve monoterpen bileşiklerinin toksisite değerlendirmesi . Hint J Exp Biol. 2020; 58 :609-16. http://nopr.niscair.res.in/handle/123456789/55047 URI. [ Google Akademik ]
      25. Mubashir K, Ganai BA, Ghazanfar K, Akbar S, Rah B, Tantry M, Masood A. Gentiana kurroo Royle'un LC-MS ile karakterize edilen metanol özü üzerinde anti-inflamatuar ve immünomodülatör çalışmalar . BMC Tamamlayıcı Alter Med. 2017; 17 : 78'dir. doi: 10.1186/s12906-017-1593-7. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      26. Hudecová A, Hašplová K, Miadoková E, Magdolenová Z, Rinna A, Collins AR, Gálová E, Vaculčíková D, Gregáň F, Dušinská M.. Gentiana asclepiadea insan hücrelerini oksidasyon DNA lezyonlarına karşı korur. Hücre Biyokimya Fonksiyonu. 2012; 30 :101–7. doi: 10.1002/cbf.1822. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      27. Alarifi S, Ali D, Alkahtani S, Verma A, Ahamed M, Ahmed M, Alhadlaq HA. Çinko oksit nanoparçacıklarına maruz kaldıktan sonra malign bir insan derisi melanom hücre hattında oksidatif stres, DNA hasarı ve apoptoz indüksiyonu. Int J Nanotıp. 2013; 8 :983–93. doi: 10.2147/IJN.S42028. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      28. Van Houten B, Santa-Gonzalez GA, Camargo M. Oksidatif stres sonrası DNA onarımı: Güncel zorluklar. Curr Opin Toksikol. 2018; 7 :9–16. doi: 10.1016/j.cotox.2017.10.009. doi. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      29. Kusar A, Zupancic A, Sentjurc M, Baricevic D. Elektron spin rezonansı ile ölçülen sarı centiyana Gentiana lutea L.'nin serbest radikal süpürücü aktiviteleri . Hum Exp Toksikol. 2006; 25 :599-604. doi: 10.1177/096032706072467. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      30. Nastasijević B, Lazarević-Pašti T, Dimitrijević-Branković S, Pašti I, Vujačić A, Joksić G, Vasić V. Gentiana lutea ekstraktlarının miyeloperoksidaz ve antioksidan aktivitesinin inhibisyonu . J Pharm Biomed Anal. 2012; 66 :191–6. doi: 10.1016/j.jpba.2012.03.052. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      31. Halliwell B, Aeschbach R, Löliger J, Aruoma OI. Antioksidanların karakterizasyonu. Gıda Kimyasal Toksikol. 1995; 33 :601–17. doi: 10.1016/0278-6915(95)00024-v. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      32. Mihailović V, Katanić J, Mišić D, Stanković V, Mihailović M, Uskoković A, Arambašić J, Solujić S, Mladenović M, Stanković N. Gentiana cruciata L.'den elde edilen secoiridoid bakımından zengin ekstraktların karbon tetraklorür kaynaklı karaciğer hasarına karşı hepatoprotektif etkileri sıçanlarda. Gıda Fonksiyonu. 2014; 5 :1795-803. doi: 10.1039/c4fo00088a. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      33. Mihailović V, Mihailović M, Uskoković A, Arambašić J, Mišić D, Stanković V, Katanić J, Mladenović M, Solujić S, Matić S. Gentiana asclepiadea L. ekstrelerinin sıçanlarda karbon tetraklorür kaynaklı karaciğer hasarına karşı hepatoprotektif etkileri . Gıda Kimyasal Toksikol. 2013; 52 :83-90. doi: 10.1016/j.fct.2012.10.034. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      34. Petrovic S, Leskovac A, Joksic G. Gentiana dinarica polifenollerinin insan lenfositleri üzerindeki in vitro radyo koruyucu özellikleri . Curr Sci (Bangalore) 2008; 95 :1035–41. [ Google Akademik ]
      35. Ježovičová M, Koňariková K, Ďuračková Z, Keresteš J, Králik G, Žitňanová I. Siyah çay ekstresinin insan lenfositlerinde oksidatif DNA hasarına karşı koruyucu etkileri. Mol Med Temsilcisi 2016; 13 :1839–44. doi: 10.3892/aa.2015.4747. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      36. Elbling L, Weiss RM, Teufelhofer O, Uhl M, Knasmueller S, Schulte-Hermann R, Berger W, Micksche M. Yeşil çay özütü ve (-)-epigallocatechin-3-gallate, başlıca çay kateşini, oksidan uygular ancak antioksidan aktiviteden yoksundur. FASEB J. 2005; 19 :807–9. doi: 10.1096/fj.04-2915fje. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      37. Hayashi M, Umezu K. Oksidatif DNA hasarından kurtulmak için homolog rekombinasyon gereklidir. Genler Genet Sist. 2017; 92 :73-80. doi: 10.1266/ggs.16-00066. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      38. Wang C, Yang J, Lu D, Fan Y, Zhao M, Li Z. Oksidatif strese bağlı DNA hasarı ve N,N- dimetilformamid tarafından indüklenen homolog rekombinasyon onarımı . J Appl Toksikol. 2016; 36 :936–45. doi: 10.1002/jat.3226. doi. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        ÇENTİYAN İle Anoreksiya Nervoza, İştahsızlık Ve Adet


        Gentiana Kökü Faydaları
        Artrite yardımcı olabilir
        Gentiana kökünde bulunan bileşikler enflamatuar durumlara yardımcı olabilir. 1 2 3 4


        Örneğin, gentiopicroside olarak bilinen centiyane kökündeki ana iridoidlerden biri, romatoid artritin tedavisine yardımcı olabilir. 1 Romatoid artrit, sağlıklı hücrelere saldıran bağışıklık sisteminden kaynaklanan kronik iltihaplı bir durumdur. Bu eklemlerde ağrı, iltihaplanma ve şişmeye yol açar. İlgili içeriğe aşağıdaki bağlantıdan ulaşabilirsiniz. Radix gentianae hakkındaki çalışmaların test tüpü ve hayvanlar üzerinde yapıldığı unutulmamalıdır. Bahettiğimiz faydaların insanlar üzerindeki etkilerini araştırmak için daha fazla çalışmaya ihtiyaç vardır. Çoğu çalışmada Gentiana bitkilerinden ekstrakte edilmiş gentiopicroside kullanılmıştır. Genellikle mevcut formlarda centiyane kökü tüketmenin, kendi başına gentiopicroside almakla aynı etkilere sahip olup olmadığı belirsizdir. Bazı araştırmaların, gentiopicroside’nin ham formlarda bulunmadığını ve sadece kurutulmuş yılan otu kökünde bulunduğunu gösterdiğini belirtmek de önemlidir. Sinüs enfeksiyonları
        Araştırmacılar, sinüs enfeksiyonu (sinüzit) olan kişilerde Gentiana kökünün anti-enflamatuar etkilerini araştırdılar. Gentiana kökü, 80 yılı aşkın süredir piyasada bulunan sinüs enfeksiyonları için bitkisel bir tedavi olan Sinupret’in bir bileşenidir. Sinupret ayrıca mineçiçeği, kuzukulağı, mürver çiçekleri ve çuha çiçeği bileşenleri içerir.


        Sindirim
        Gentiana türlerindeki iridoidler ve sekoiridoidler iştahı artırabilir ve sindirim sistemi için koruyucu etkiler sağlayabilir. Bu bileşikler arasında gentiopicroside, amarogentin ve amaroswerin bulunur


        Gentiana lutea
        Aynı zamanda bu bileşikler, centiyane kökünün acı tadına katkıda bulunur. Acı maddeler tüketmek, vücudun tükürük ve mide suları salgılaması için uyarmaya yardımcı olabilir, böylece iştahı ve iyi sindirimi teşvik edebilir. Anoreksiyalı 50 çocukta yapılan bir çalışma, günlük Gentiana kökü ekstresi alanların, bir plasebo grubuna kıyasla 2 ay sonra iştah, kilo ve kalori alımının önemli ölçüde arttığını gösteriyor. Gentiana kökünün olası iştah açıcı etkileri, aperatifler ve acı likörlerde ortak bir bileşen olmasının nedenlerinden biridir. İştahsızlığın tedavisine ek olarak, Gentiana kökü mide, mide bulantısı ve gazı tedavi etmeye de yardımcı olabilir. Bununla birlikte, yakın tarihli hiçbir insan çalışması, centiyane kökünün bu sorunlara yardımcı olabileceğini önermemiştir. Kullanımını destekleyecek yeterli kanıt bulunmamaktadır.

        Aslında, sindirim sıvılarını uyaran centiyane kökü gibi ürünler bazı sorunları daha da kötüleştirebilir. Örneğin çok fazla mide asidi, asit reflüsü ve ülserlere neden olabilir Radix gentianae Sinüziti olan çocuklarda Sinupret kullanımına ilişkin yukarıda bahsedilen çalışma da, ürüne dair hiçbir yan etki bildirmedi. Yine de Sinupret etiketi, deri döküntüsü ve mide rahatsızlığı gibi bazı olası yan etkileri listeler. Ayrıca bazı kişiler Gentiana köküne aşırı duyarlı olabilir ve yan etkiler geliştirebilir. Genel olarak, centiyane kökünün kendi başına güvenliğine ilişkin herhangi bir belge veya mevcut çeşitli preparatları ve önerilen dozaj aralığı yoktur. Bu bitki hakkında yeterli bilgi olmadan çocuklar, hamile ve emziren kadınlar kullanmamalıdır. Ek olarak, sıçanlarda kan basıncını düşürdüğü gösterilmiştir. Bu kanıtın insanlar için geçerli olması gerekmez. Bununla birlikte, tansiyonu düşük olan veya tansiyonu düşürmek için ilaç alan kişiler güvenliklerine dikkat etmeli ve Gentiana kökünden kaçınmalıdır.

        Dozaj ve Formlar

        Gentiana kökü, küçük miktarlarda tüketildiğinde çoğu sağlıklı insan için muhtemelen güvenlidir. Örneğin, insanlar onu Sinupret’teki diğer bitkilerle kombinasyon halinde veya bir likörün parçası olarak tüketebilir. Bununla birlikte, yukarıda bahsedildiği gibi standartlaştırılmış bir dozajı desteklemek için insanlarda tıbbi miktarlarda etkileri hakkında yeterli bilgi yoktur. Gentiana kökü takviyelerinde listelenen önerilen miktarlar değişiklik gösterir. Sıvı özütler için 0.5-1.5 mL, haplar için 500-900 mg ve çay için 1-2 çay kaşığıdır. Genel olarak, yılan otu kökünün terapötik kullanımını ve güvenliğini destekleyen bilimsel kanıtlar azdır. Bu nedenle, ek etiketlerde listelenen içerikler ve iddialar doğru olmayabilir. Gentiana kökü takviyelerini denemeden önce sağlık uzmanınızla konuşun. Herhangi bir yan etki yaşarsanız kullanmayı bırakın.
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5
          ÇENTİYAN İle İştahsızlık


          Çentiyan Nedir Aneroksiya Nervoza Nedir Kilo Alma Yolları Aşırı Zayıflarsak Ne Olur Baygınlık.


          ÇENTİYAN İle İştahsızlık


          ÇENTİYAN İle Sistemik Lupus Ve İştahsızlık


          Mide kanseri için geleneksel Çin tıbbının çok ölçekli mekanizmalarını ortaya çıkaran sistem farmakolojisi

          Lulu Zhang , 1 Numaralı Yue Xiao , 1 Numaralı Ruijie Yang , 1 Numaralı Siyi Wang , 1 ShuangXin Ma , 2 Jianling Liu , 1 Wei Xiao , 3 ve Yonghua Wang 1
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi İlişkili Veriler

          Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
          Git: Soyut


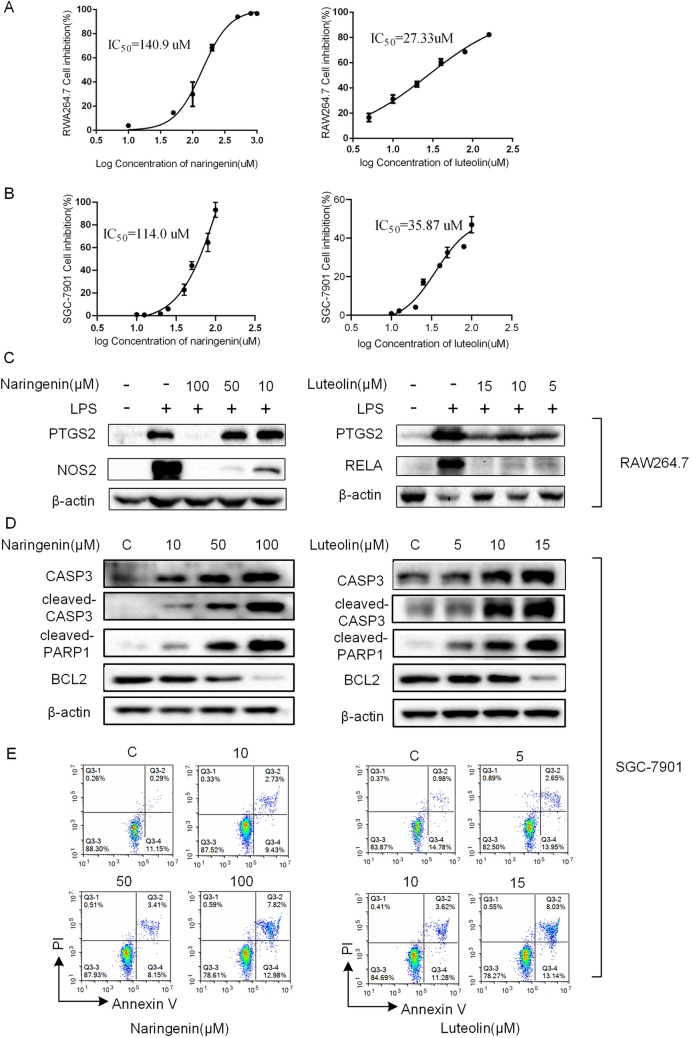
          Karmaşık etiyoloji nedeniyle, mide kanserinin tedavisi çağdaş tıp için zorlu bir mücadeledir. Mevcut tedavi yöntemi, diğer tedavilerle desteklenen geleneksel cerrahi prosedürlere odaklanmaktadır. Bu diğer tedaviler arasında Geleneksel Çin Tıbbı (TCM) önemli bir rol oynamaktadır. Burada, PRGRC'nin Pinellia ternata (Thunb.) Breit'ten oluşan mide kanseri üzerindeki potansiyel moleküler mekanizmasını ortaya çıkarmak için sistem farmakolojisi yaklaşımını kullandık . , Rheum palmatum L. , Gentiana scabra Bunge , Radix Aucklandiae ve Citrus aurantium L.. Bu yaklaşım, aktif bileşiklerin taranması, hedef tahmini ve yolların değerlendirilmesi için farmakokinetik analizi farmakodinamik değerlendirme ile birleştirir. İlk olarak, farmakokinetik değerlendirme ve hedef tahmin modelleri aracılığıyla 83 potansiyel bileşik ve 184 mide kanseri ile ilgili hedef tarandı. Ardından, ağ analizinin sonuçları, PRGRC'nin hedeflerinin esas olarak iki yönü içerdiğini öne sürdü: apoptoz ve iltihaplanma. Son olarak, temsili bileşikler olarak iyi farmakokinetik aktiviteye sahip naringenin ve luteolin kullanarak yukarıdaki analizin güvenilirliğini hücresel düzeyde doğruladık. Genel olarak, PRGRC'nin mide kanseri gelişimini çok ölçekli bir perspektiften etkileyebileceğini bulduk. Bu çalışma, TCM mekanizmasını analiz etmek için yeni bir yön sağladı.

          Konu terimleri: Kanser, Sistem biyolojisi
          Git: Giriş


          Gastrointestinal sistemin en yaygın malignitelerinden biri olan mide kanseri, yüksek insidansa ve kötü prognoza sahiptir 1 . Atipik erken semptomlar nedeniyle, mide kanserli hastaların yaklaşık %70'i tanının geç evresindeydi ve bu da cerrahi ve radyoterapinin etkinliğini önemli ölçüde sınırladı. Geçtiğimiz yıllarda, sisplatin (DDP) ve 5-florourasil gibi geleneksel kemoterapi ilaçları, ilerlemiş mide kanseri olan hastalara büyük klinik faydalar sağlamıştır. Ancak ilaç direnci ve sitotoksisite nedeniyle klinik etkinlik giderek kötüleşir 2. Geleneksel Çin Tıbbı (TCM), düşük toksisite, yüksek güvenlik ve etkinliğe sahip ve hem temel patofizyolojiyi hem de sendrom özelliklerini etkileyen mide kanseri üzerinde iyileştirici etkileri olan doğal bir ilaçtır. Ve şimdi, bir araştırma noktası olarak ortaya çıktı 3 .

          Çoklu aktif bileşiklerin sinerjistik farmakolojik ve farmakokinetik etkilerinden dolayı, çoklu bitkilerden oluşan TCM formülleri çeşitli hastalıkların tedavisinde önemli bir rol oynamaktadır. Bu arada, mide kanserini tedavi etmek için birçok şifalı bitki ve formül başarıyla kullanılmıştır. Bu makale, beş bitkiden oluşan bu formüllerden biri olan PRGRC'yi açıklamaktadır: Pinellia ternata (Thunb.) Breit. , Rheum palmatum L. , Gentiana scabra Bunge , Radix Aucklandiae ve Citrus aurantium L. Bu beş bitki arasında Pinellia ternata (Thunb.) Breit olduğu bildirilmiştir .S fazında SGC7901 hücrelerini bloke edebilir, böylece hücre döngüsü ilerlemesini etkileyerek tümör aktivitesini inhibe edebilir 4 , 5 . Daha sonra, önceki araştırmalar, Rheum palmatum L. ve Radix Aucklandiae'nin kanser hücresi metastazını engelleyebileceğini ve apoptozla ilişkili proteinlerin 6 , 7 ifadesini düzenleyerek apoptozu indükleyebileceğini göstermiştir . Literatürdeki raporlar, Gentiana scabra Bunge ve Citrus aurantium L.'nin anti-inflamatuar, anti-tümör ve anti-oksidan özellikleri nedeniyle hastalıklarda yaygın olarak uygulandığını göstermektedir 8 , 9. PRGRC için, karmaşık bileşimi nedeniyle, mide kanseri üzerindeki moleküler mekanizma henüz net değildi. Bu nedenle, TCM'nin mekanizmasını açıklamak için sistematik bir yaklaşıma acilen ihtiyaç vardır.

          Son zamanlarda, sistem farmakolojisinin gelişimi, TCM'leri moleküler ve hücresel düzeylerden doku ve organizma düzeylerine kadar değişen çok sayıda karmaşıklık ölçeğinde keşfetmenin yeni bir yolunu sağladı 10 . Önceki çalışmalarımızda, ilaçların 11 çoklu mekanizmalarının tanımlanmasını kolaylaştıran, ilaç değerlendirmesinin ADME karakterizasyonunu, hedef tahminini ve ağ analizini içeren yeni bir sistem farmakolojisi yaklaşımını başarıyla oluşturduk . Bu platform aracılığıyla Radix Salviae miltiorrhiza, Sophora flavescens , Sedum rosea ve Glycyrrhiza uralensis Fisch dahil olmak üzere çeşitli otlar. kanser, depresyon ve kardiyovasküler hastalıkların tedavisinde potansiyel mekanizmalara sahip olduğu doğrulanmıştır.

          Bu nedenle, bu makalede, potansiyel bileşikler elde etmek için öncelikle PRGRC'de bulunan bileşiklerin oral biyoyararlanım (OB) 12 ve ilaca benzerlik (DL) 13 özelliklerini sistem farmakolojisi yaklaşımıyla analiz ettik. Ardından, entegre hedef tahmin yöntemlerine dayalı olarak, WES 14 ve SysDT 15biyolojik ve matematiksel modelleri birleştiren, taranan potansiyel bileşiklerin homolog hedeflerini tahmin ettik. Daha sonra elde edilen hedefler fonksiyonel zenginleştirme analizi ile doğrulanmış ve ilgili ağlar oluşturulmuştur. Son olarak, aktif bileşikler, aktif hedefler ve yollar arasındaki altta yatan karşılıklılığı sistematik olarak ortaya çıkarmak için ağ farmakolojisi ve mide kanseri ile ilgili sinyal yolları değerlendirmesi yapıldı. Yukarıdakilere dayanarak, PRGRC'nin mide kanseri tedavisindeki mekanizmasını araştırdık. Ek olarak, iyi farmakokinetik aktivitelere sahip naringenin ve luteolin, in vitro daha fazla doğrulama için taranan potansiyel bileşiklerin temsilcileri olarak kullanıldı. Sonuçlar, PRGRC'nin çok ölçekli mekanizmasını inceledi,

          Git: Sonuçlar

          Aktif bileşik taraması


          PRGRC'nin mide kanseri üzerindeki çok bileşenli ve çok hedefli özelliklerini ortaya çıkarmak için, PRGRC'deki beş bitkinin tümünün TCMSP veri tabanından toplam 442 bileşik topladık. PRGRC'nin potansiyel biyoaktif bileşiklerini taramak için, OB ve DL dahil olmak üzere bu bileşiklerin ADME (Absorpsiyon, Dağılım, Metabolizma, Atılım) özelliklerini değerlendirdik. Tablo S1'de gösterildiği gibi , 59 bileşik standarda ulaştı (OB ≥ %30, DL ≥ 0.18). Ayrıca daha doğru sonuçlar için kriterlere uymayan ancak literatürde antikanser aktivitesi olduğu bildirilen bazı bileşikler de eklenmiştir. Bu nedenle, toplam 83 potansiyel bileşik taradık (PRGRC'nin tüm 442 bileşiğinin %18,8'ini oluşturuyor) (Ek Tablo S1 ). İlaç hedefleme ve analizi


          Mide kanseri tedavisinde PRGRC bileşiklerinin hedeflerini araştırmak için, WES ve SysDT algoritmaları aracılığıyla aktif bileşiklerle ilişkili toplam 365 doğrudan ve dolaylı hedef belirledik. Sonuçlar, çoğu bileşiğin çoklu hedefler üzerinde hareket ettiğini ve biyoaktif moleküllerin çeşitli farmakolojik etkilerini kanıtladığını gösterdi. Daha sonra, hastalık zenginleştirme analizi için 365 hedefi CTD veri tabanına eşledik, böylece mide kanseri ile ilişkili 184 hedef elde ettik (Ek Tablo S2 ). Mide kanseri ile ilgili hedefler arasında B-Hücresi CLL/Lenfoma 2 (BCL2) 16 , Kaspaz 3 (CASP3) 17 , interlökin-10 (IL-10), nitrik oksit sentaz, indüklenebilir (NOS2), nükleer faktör kappa-B (NFκB), Siklooksijenaz 2 (COX2) 18ve diğer proteinler, mide kanseri üzerindeki bileşiklerin ve hedeflerin sinerjistik etkisini gösterebilecek şekilde, mide-bağırsak hastalıklarının bağışıklık düzenlemesi, apoptozu ve enflamatuar süreçlerinde yer almıştır.

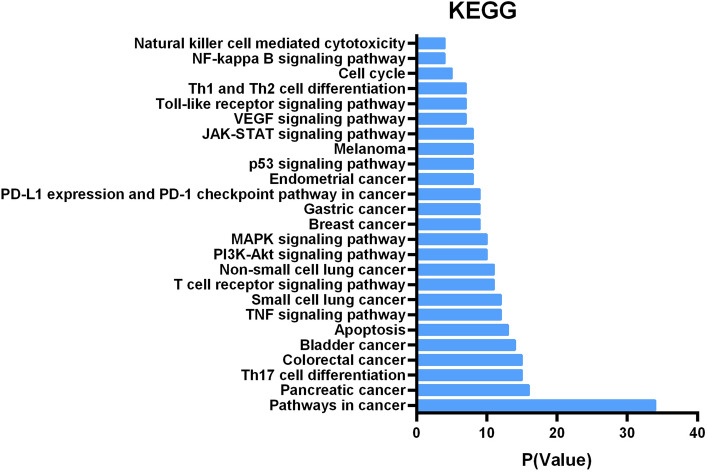
          KEGG veri tabanındaki 19 184 hedefi zenginleştirdik ve zenginleştirilmiş ilk 25 KEGG terimi, Şekil 2'de listelendi. 1, bu hedeflerin çoğunun apoptoz, hücre döngüsü, TNF sinyal yolu, PI3K-AKT sinyal yolu, Doğal öldürücü hücre aracılı sitotoksisite vb. Ayrıca bu hedefler, pankreas kanseri, kolorektal kanser, mesane kanseri, meme kanseri, mide kanseri ve benzeri dahil olmak üzere birçok kanser yolunda yer alıyordu. Bunlar, PRGRC'nin esas olarak bağışıklığı ve apoptozu düzenleyerek mide kanseri üzerinde terapötik etki gösterebileceğini öne sürdü.

          Şekil 1
          Potansiyel hedeflerin Kyoto Genler ve Genomlar Ansiklopedisi (KEGG) analizi. Y ekseni, potansiyel hedeflerin KEGG'sinde önemli ölçüde zenginleştirilmiş "yol" kategorileri gösterdi ve X ekseni, bu terimlerin zenginleştirme puanlarını gösterdi (P değeri < 0.01). Bağışıklık ile ilgili GO analizi


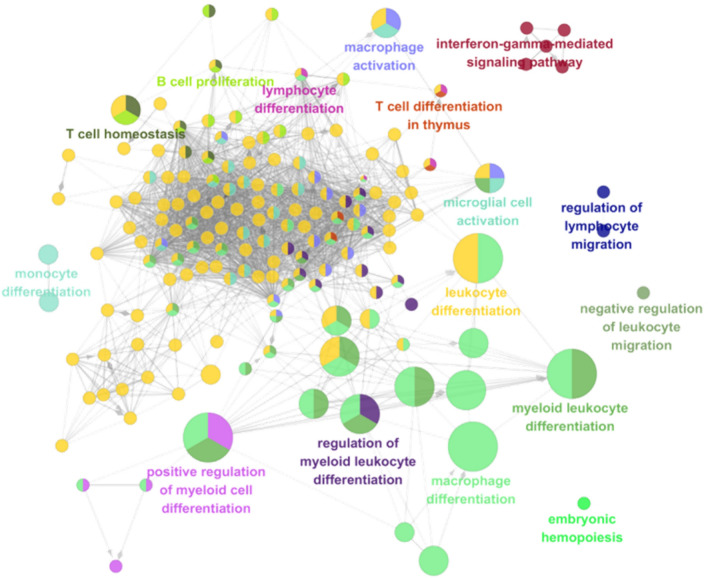
          Mide kanseri ile ilgili hedeflerin aracılık ettiği olası yolları zenginleştirdik. PRGRC'nin mide kanseri üzerindeki rolünü daha fazla göstermek için, sitoscape3.6.0 ile 184 potansiyel hedefin biyolojik sürecini analiz ettik. Şekil l'de gösterildiği gibi 2, bu hedeflerin çeşitli bağışıklıkla ilgili biyolojik süreçlerle ilişkili olduğunu bulduk, örneğin: T hücresi farklılaşması, lenfosit göçünün düzenlenmesi, lökosit farklılaşması, B hücresi çoğalması, T hücresi homeostazı, miyeloid lökosit farklılaşması, makrofaj farklılaşması vb. . Sonuçlar, PRGRC'nin potansiyel immünomodülatör yeteneğinin, anti-kanser mekanizmasının bir parçası olabileceğini gösterdi.

          şekil 2
          Bağışıklık ile ilgili GO analizi. Daireler, bağışıklıkla ilgili süreçte yer alan hedefleri temsil ediyordu. Farklı renkler, karşılık gelen farklı bağışıklıkla ilgili biyolojik süreçleri temsil ediyordu. Bir dairenin birden fazla rengi varsa, bu, hedefin bağışıklıkla ilgili birden fazla sürece dahil olduğu anlamına geliyordu. Ve dairenin boyutu, hedef ile karşılık gelen biyolojik süreç arasındaki korelasyon derecesini temsil ediyordu. Dairenin boyutu ne kadar büyükse, hedef ile biyolojik süreç arasındaki korelasyon o kadar büyük olur. Gri çizgiler, bileşikler ve hedefler arasındaki etkileşimleri temsil ediyordu. Bileşik hedef ağ ve analiz


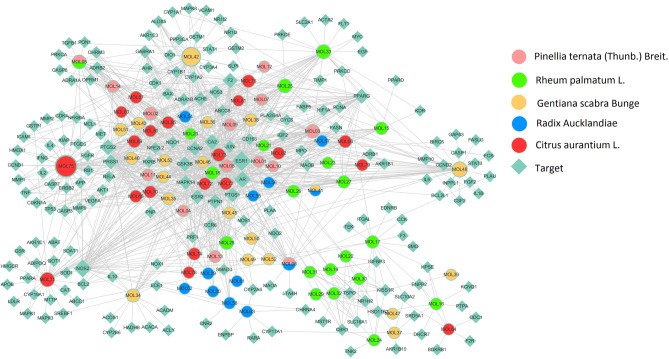
          Bileşik-hedef ilişkisini doğrudan yansıtmak için Cytoscape3.6.0 ile bir bileşik-hedef (CT) ağı oluşturduk. Şekil l'de gösterildiği gibi 3267 düğüm ve 962 taraftan oluşan CT ağı. 267 düğüm, 83 potansiyel bileşik ve 184 hedeften oluşuyordu. CT ağını analiz ederek, PRGRC'nin çok hedefli özelliklerini açıklayan her bir bileşiğin ortalama hedef derecesinin 12 olduğunu bulduk. Bileşiklerin ve hedeflerin hedefleme ilişkileri, Ek Tablo S3'te gösterilmiştir .

          Figür 3
          Bileşik Hedef ağı. Zeytin yeşili elmaslar potansiyel hedefleri temsil ediyordu. Diğer beş renk, PRGRC'de beş farklı bitkinin aktif moleküllerini temsil ediyordu. Bir çemberin birden fazla rengi varsa, bu molekülün birden fazla bitkide var olduğu anlamına gelir. Dairenin boyutu ne kadar büyükse, hedef ile bileşik arasındaki korelasyon o kadar büyük olur. Gri çizgiler, bileşikler ve hedefler arasındaki etkileşimleri temsil ediyordu.

          83 potansiyel bileşik arasında, naringenin (MOL71) ve luteolin'in (MOL75) çeşitli kanser hücre dizilerinin çoğalmasını önlemenin yanı sıra anti-enflamatuar etkiler gösterdiği bilinmektedir. 36 dereceli ve iyi farmakokinetik ve farmakodinamik özelliklere sahip Naringenin'in (MOL71) bir PTGS2 ve NOS220 inhibitörü olarak anti-enflamatuar etkiler gösterdiği bildirilmiştir . Bu arada araştırmalar en yüksek dereceye sahip luteolin'in (MOL75) RELA ve AP-121'in aktivasyon yolunu bloke ederek inflamasyonla ilişkili gen ekspresyonunu baskılayabildiğini göstermiştir . Gentiopikrosid (MOL50) 22 ve Rhein (MOL18) 23PI3K-Akt sinyal yolunu düzenleyerek tümör gelişimini engellediği kanıtlanmıştır. Araştırmalar, beta-sitosterol (MOL05) 24'ün östrojen reseptörü (ESR1) ve transkripsiyon faktörü AP-1 (JUN) aktivatörü olarak görev yaptığını göstermiştir. İlgili literatürlere başvurarak, kaempferolün (MOL42) in vivo 25 primer B hücrelerini ve T hücrelerini yöneterek adaptif humoral bağışıklığı düzenleme etkisine sahip olduğunu ve proinflamatuar sitokin TNF- salgılanmasını inhibe ederek inflamatuar süreçlerin yoğunluğunu azaltabileceğini bulduk. a, ayrıca anti-enflamatuar sitokin IL-10 26'nın salgılanmasını artırarak . Bu nedenle, PRGRC'nin bu potansiyel bileşikleri, enflamatuar tepkileri modüle ederek hareket etti.

          184 potansiyel hedef düğümden birçok potansiyel hedef, PRGRC'nin mide kanseri üzerinde sinerjizm etkileri veya aditif etkileri sergileyebilen farklı bitkilerden oluşan çoklu bileşiklerle bağlantılıydı. Örneğin, NOS2, bağışıklık efektör sürecinin 27 düzenlenmesi ile ilişkilidir . COX2, siklooksijenazın indüklenebilir formudur ve araşidonik asidin prostanoidlere (prostasiklinler, prostaglandinler ve tromboksanlar) dönüştürülmesindeki hız sınırlayıcı adımdan sorumludur. Prostanoidler, proinflamatuar mediatörler olarak iyi karakterize edilmiştir 28 . Hem CASP3 hem de BCL2, kanser hücresi apoptozunu düzenleyerek ve indükleyerek tümör büyümesini engelleyen apoptozla ilişkili proteinlerdi 29. CT ağ analizi, naringenin ve luteolin'in yukarıda belirtilen bu hedefleri hedefleyebileceğini gösterdi.

          Bu nedenle, bu bileşikler ve hedefler mide kanseri ile yakından ilişkili olabilir, bu da PRGRC'nin mide kanseri üzerindeki potansiyel terapötik etkisini çoklu bileşiklerin ve çoklu hedeflerin reaksiyonunu modüle ederek göstermiştir. Hedef yol ağı ve analizi


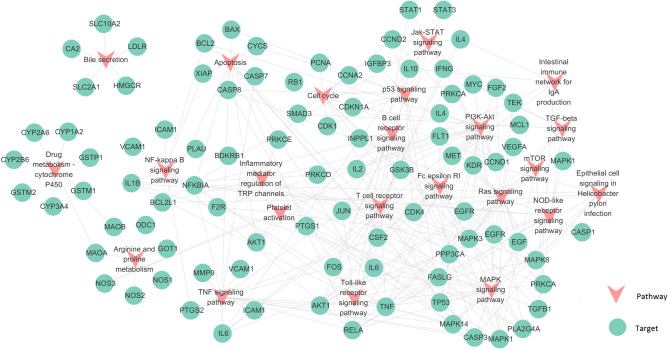
          KEGG ve bağışıklık ile ilgili GO terimlerini entegre ederek, ana yollar olabilecek ve mide kanserinde önemli bir rol oynayabilecek 23 önemli ölçüde zenginleştirilmiş yol (P-değeri <0.01) keşfettik. Şekil l'de gösterildiği gibi 4, 116 düğümden ve 268 kenardan eşlenen ve yol başına ortalama derecesi 11,7 olan bir TP ağını eşledik. 116 düğüm, 23 yol ve 93 hedef içeriyordu (Ek Tablo S4). Bu arada ağ, potansiyel hedeflerin çoğunun birden fazla yolla bağlantılı olduğunu gösterdi. PI3K-Akt sinyal yolu (derece = 29), NF-κB sinyal yolu (derece = 11), TNF sinyal yolu (derece = 17), Apoptoz (derece = 14), Toll benzeri reseptör sinyal yolu (derece = 14) ve T hücresi raportör sinyal yolu (derece = 17), PRGRC'nin anti-tümör etkileri üretmesi için anahtar yollar olabilir. Aslında, bu yolların iltihaplanma ve bağışıklıktan hücre büyümesine, proliferasyona ve apoptoz 30 , 31'e kadar değişen tepkilerde yer alanlar da dahil olmak üzere birçok genin ekspresyonunu düzenlediği tespit edilmiştir .

          Şekil 4
          Hedef-Yol ağı. Pembe düğümler, mide kanseri ile ilgili olabilecek KEGG veri tabanı tarafından çıkarılan yolları, zeytin yeşili daireler ise hedefleri temsil ediyordu. Gri çizgiler, yollar ve hedefler arasındaki etkileşimleri temsil ediyordu.

          Özetle PRGRC, kanserle ilgili yollarda yer alan hedefler üzerinde hareket ederek mide kanserinin tedavisinde rol oynamıştır. Yol analizi


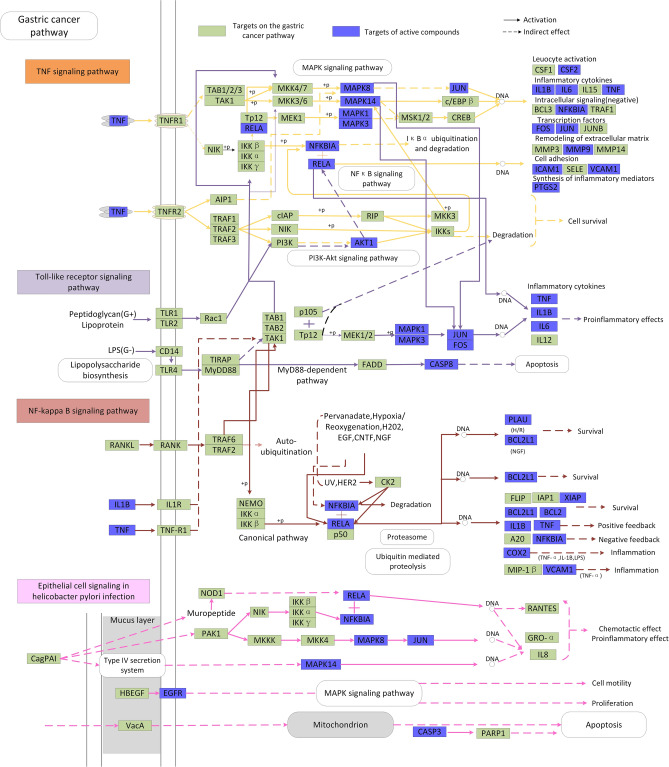
          Tüm bozukluklar, bir stres sinyal yolağının aktivasyonu ve aynı anda enflamatuar sitokinlerin üretimi gibi ortak özelliklere veya birleşik hücresel süreçlere sahiptir. Bu nedenle, PRGRC'nin mekanizmasını daha fazla aydınlatmak için mide kanseri ile yakından ilgili hedefleri ve yolları topladık. Ardından patolojik ve klinik verilere göre “mide kanseri yolunu” derledik. Şekil l'de gösterildiği gibi 5, mide kanseri yolu iki temsili terapötik modüle ayrıldı (İmmünoregülasyon modülü ve Apoptoz modülü).

          Şekil 5
          Mide kanseri yolu ve terapötik modüller. Mavi kareler etkinlik hedeflerini, yeşil kareler mide kanseri yolundaki diğer hedefleri temsil ediyordu. Kesintisiz oklar aktivasyonu, kesikli oklar inhibisyonu gösterdi. Farklı yollar farklı renklerle temsil edildi.

          immünoregülasyon modülü


          Mide kanseri tedavisinde hümoral ve hücre aracılı bağışıklık mekanizmalarının yer alması muhtemeldir. Şekil l'de gösterildiği gibi 5, birçok hedef, immün ve inflamatuar yanıtlarla ilişkilendirildi. Örneğin, NF-κB'nin (RELA), IL-2, IL- 4 , IL- 1032 ve TNF- gibi enflamatuar sitokinlerin ekspresyonuna aracılık ederek, proinflamatuar gen ekspresyonunun en önemli düzenleyicilerinden biri olduğu gösterilmiştir. α33 ve NF-κB'nin aktivasyonu, mide kanseri 34 oluşumuna yol açan mide-bağırsak mukozasının iltihaplanmasına neden oldu . IL-2'nin, T hücrelerini ve NK hücresi aracılı bağışıklık tepkilerini 35 geliştiren bir T hücresi büyüme faktörü olduğu kanıtlanmıştır . Ayrıca literatürler, IL-10'un bağışıklık hücrelerinin, enflamatuar hücrelerin ve diğer hücrelerin biyoregülasyonuna katılan çok işlevli bir negatif düzenleyici olarak hareket ettiğini ortaya koydu36. Şekil l'de gösterildiği gibi 3ve Ek Tablo S3 , naringenin (MOL71), luteolin (MOL75), kaempferol (MOL42), ursolik asit (MOL48), baicalein (MOL03) ve isovitexin (MOL35) gibi bazı bileşiklerin hepsinin NF-κB'yi hedeflediğini elde ettik. Mide kanserinde hayati bir rol oynamıştır. Makrofajlar, bakteriyel enfeksiyonlara veya diğer bağışıklık tepkilerine yanıt verdi ve Helicobacter pylori'yi 37 öldürmek için interferon ile sinerji oluşturabilen TNF'yi salgıladı . Tüm bunlar, PRGRC'nin mide kanserini bağışıklık ve enflamatuar yanıtların düzenlenmesi yoluyla tedavi edebileceğini gösterdi.

          Apoptoz süreci


          Apoptoz, çok hücreli organizmalarda meydana gelen programlanmış hücre ölümü sürecidir. Normal koşullar altında homeostaz, hücre proliferasyonu ve apoptoz 38 arasındaki denge ile korunur . Anormal apoptoz ve gastrik epitel hücrelerinin aşırı proliferasyonu, mide kanserine neden olan gastrik mukozal lezyonların ortaya çıkmasına neden oldu 39 . Literatürler, mide kanserinin mide epitel hücrelerinin apoptozunu artıran Helicobacter pylori enfeksiyonu ile yakından ilişkili olduğunu göstermiştir 40 . Sitotoksin ilişkili gen A (CagA) ve Vakumlu sitotoksin gen A (VacA), Helicobacter pylori 39'un ana patojenik faktörleriydi.mide mukozasında çeşitli sitokinlerin üretimini indükleyerek mukozal epitel hücrelerinin apoptozuna yol açabilir 41 , 42 . Aloe-emodin (MOL25) ve emodinin (MOL33) Helicobacter pylori büyümesini engelleyebileceği ve CagA ve VacA'nın neden olduğu gastrik mukoza hücrelerinin apoptozunu azaltabileceği, böylece mide mukozasını koruyabileceği ve mide kanserini tedavi etme amacına ulaşacağı bildirilmiştir. 43 .

          Önceki çalışmalar, bcl-2 ailesinin mide mukozasının apoptozunda önemli bir rol oynadığını doğrulamıştır. Mide kanseri meydana geldiğinde, BCL2 pro-apoptotik proteinleri mitokondriyal membrana hedefleyerek mide mukozal hücrelerinin anormal apoptozunu inhibe etti, böylece mide kanserinin gelişimini önledi 44 , 45 . Önemli bir pro-apoptotik faktör olan kaspaz-3, gastrik mukozal epitel hücrelerinin anormal apoptozunu düzenlemek için bölünmüş CASP3 olarak aktive edilebilir 46 . Çalışmalar, BCL2'nin yalnızca CASP3'ün bir yukarı akış faktörü olarak değil, aynı zamanda her ikisi de apoptoz iletimi sürecinde birbiriyle ilişkili ve karşılıklı olarak kısıtlanmış olan aşağı akışta CASP3'ün doğrudan bir substratı olarak hareket edebildiğini bulmuştur 47 , 48.

          PARP (poli (ADP-riboz) polimeraz) ailesi proteinleri, baz eksizyon onarım yolu yoluyla tek sarmallı DNA kırıklarının onarımında gerekliydi. PARP1, yüksek oranda korunmuş bir DNA bağlayıcı proteindi ve PARP ailesinin her yerde en çok ifade edilen üyesiydi. Çok sayıda çalışma, PARP1'in genomik stabiliteyi korumanın yanı sıra DNA onarımını ve transkripsiyonel süreçleri düzenlemede rol oynadığını öne sürdü. PARP1'in artık hücre hayatta kalması ve hücre ölümü için merkezi bir düzenleyici merkez olduğu ve ayrıca tümör gelişimi ve iltihaplanmasıyla ilgili bir dizi transkripsiyon faktörünün önemli bir bileşeni olduğu düşünülüyordu. CASP3, tam uzunluğu 116 kDa olan PARP1'i 31 kDa ve 85 kDa'lık iki parçaya bölerek PARP1'in düzgün çalışmamasına ve DNA kırılmasına neden olabilir. PARP1'in bozulması, apoptozun ayırt edici özelliklerinden biriydi.49 .

          Naringenin (MOL71) ve luteolin (MOL75), mide kanseri gelişimini engellemek için BCL2 ve CASP3'ün ekspresyonunu düzenledi ve dolaylı olarak PAPR1'in ekspresyonunu düzenledi. Bu nedenle, yukarıdakilerin tümü, PRGRC'deki aktif bileşenlerin çeşitli sitokinleri ve yolları aktive edebildiğini ve bağışıklık ve apoptozu düzenleyerek mide kanserini tedavi edebileceğini öne sürdü. deneysel doğrulama


          Bileşiklerle işlenmiş hücre canlılığı analizi


          Yol analizinden, aktif bileşiklerin mide kanseri üzerindeki sinerjistik etkileri belirlendi. Sistem farmakolojisi yaklaşımıyla taranan naringenin (MOL71) (OB = %59,29, DL = 0,21, derece = 36) ve luteolin (MOL75) (OB = %36,16, DL = 0,25, derece = 49) iyi performans gösterdiği tespit edilmiştir. farmakodinamik özellikler. Bu nedenle, kanser hücreleri ve enflamatuar hücreler üzerindeki etkinliği araştırmak üzere in vitro deneyleri tasarlamak için temsili bileşikler olarak naringenin ve luteolin seçtik.

          CCK-8 tahlili, naringenin ve luteolin ile muamele edilmiş RAW264.7 hücrelerinin IC50'sinin sırasıyla 140.9 uM ve 27.33 uM olduğunu gösterdi ( Şekil 1a). 6A). Daha sonra, naringenin ve luteolin ile muamele edilmiş SGC-7901 hücrelerinin IC50'si sırasıyla 114 uM ve 35.87 uM olmuştur (Şekil 1a). 6B). Ek Şekil S1 A'da gösterildiği gibi, naringenin ve luteolin ile tedavi edilen AGS hücrelerinin IC50'si sırasıyla 140.6 uM ve 34.38 uM idi. Bu sonuçlar, naringenin ve luteolin'in enflamatuar hücreler ve mide kanseri hücreleri üzerinde önemli bir inhibitör etkiye sahip olduğunu göstermiştir. Daha düşük naringenin ve luteolin dozları yukarıdaki hücrelerin yaşayabilirliğini engellemediğinden, takip deneyleri için naringenin (10, 50 ve 100 uM) ve luteolin (5, 10 ve 15 uM) konsantrasyonları seçildi.

          Şekil 6
          Anti-enflamatuar ve apoptoz ile bağlantılı bileşiklerin potansiyel etkilerinin in vitro doğrulanması. ( A, B ). Sırasıyla naringenin (Sol) ve luteolin (Sağ) ile işlenmiş RAW264.7 hücrelerinin ( A ) ve SGC-7901 hücrelerinin ( B ) inhibisyonunun CCK-8 testi . X ekseni ilaç konsantrasyonunu gösterdi. Y ekseni, hücre inhibisyonunu gösterdi. ( C ) RAW264.7 hücreleri, 2 saat süreyle naringenin (Sol) ve luteolin (Sağ) ile ön işleme tabi tutuldu, ardından 18 saat süreyle LPS'ye (1 ug/ml) maruz bırakıldı. Daha sonra NOS2, RELA ve PTGS2 western blot ile ölçüldü. β-aktin yükleme kontrolü olarak kullanıldı. Lekeler, antikorlarla hibridizasyondan önce kesildi. Tam uzunluktaki lekeler / jeller, Ek Şekiller 1'de sunuldu. Ö2 – Ö7. ( D ) Western blot, SGC-7901 hücrelerinde apoptotik proteinlerin (CASP3, bölünmüş-CASP3 ve bölünmüş-PARP1, BCL2) ekspresyonunu gösterdi. Lekeler, antikorlarla hibridizasyondan önce kesildi. Tam uzunluktaki lekeler / jeller, Ek Şekiller 1'de sunuldu. Ö8 – Ö16 . ( E ) SGC-7901 hücrelerinde apoptoz, Annexin V-FITC/PI bağlanması ile naringenin (Sol) ve luteolin (Sağ) ile 24 saatlik tedaviden sonra değerlendirildi ve akış sitometri analizi ile ölçüldü.

          Anti-enflamatuar ve apoptoz ile ilişkili bileşiklerin potansiyel etkilerinin in vitro doğrulanması


          Naringenin ve luteolin'in potansiyel anti-enflamatuar etkilerini daha fazla değerlendirmek için, in vitro olarak naringenin ve luteolin içeren veya içermeyen LPS ile tedavi edilen RAW264.7 hücreleri kullandık. Daha sonra, bu iki bileşiğin anti-enflamatuar etkilere sahip olup olmadığını doğrulamak için PTGS2, NOS2 veya RELA'nın protein ekspresyon seviyelerini western blot ile doğruladık. Sonuçlar Şek. 6C, LPS ile tedavi edilen RAW264.7 hücrelerinde PTGS2, NOS2 ve RELA'nın protein ekspresyon seviyelerinin, kontroldekilerden önemli ölçüde daha yüksek olduğunu gösterdi (Şekil 1b). 6C). 18 saatlik naringenin ve luteolin tedavisinden sonra, beklendiği gibi, üç proteinin üretiminin, LPS grubuna keskin bir zıtlık içinde durduğunu bulduk (Şekil 1b). 6C). Bu sonuçlar, PRGRC'nin bağışıklık tepkisini modüle ederek mide kanseri üzerinde terapötik etki gösterdiğini öne sürdü.

          Bu arada, naringenin ve luteolin'in anti-apoptotik etkisini değerlendirmek için SGC-7901 ve AGS hücrelerinde BCL2, CASP3, bölünmüş-CASP3 ve bölünmüş-PARP1 proteinleri üzerinde western blot gerçekleştirdik. SGC-7901 hücrelerinin sonuçları, Şekil 2'de gösterilmiştir. 6D ve AGS hücrelerinin sonuçları Ek Şekil S1 B'de gösterildi. İki hücre hattının WB analizi, her ikisi de BCL2 proteini ekspresyonunun naringenin ve luteolin tedavisi ile azaldığını gösterdi. Bununla birlikte, bu iki proteinin farklı özellikleri göz önüne alındığında, CASP3 ve bölünmüş CASP3'ün protein ifadesi, beklenen sonuçlarımızla tutarlı olan BCL2'nin tersi gibi göründü. Bu arada, uygulanan grupta CASP3'ün ifadesi arttıkça, PARP1 bölündü ve bu da parçalanmış-PARP1'in (85 kDa) yüksek ifadesiyle sonuçlandı. Ayrıca, kontrol grubuyla karşılaştırıldığında akış sitometrisi analizi ile naringenin ve luteolin, insan SGC-7901 hücrelerinde apoptozu önemli ölçüde tetikledi (Şekil 1a). 6E) ve AGS hücreleri (Ek Şekil S1 C). Bu sonuçlar, PRGRC'nin mide kanseri hücrelerinin apoptozunu indükleyebileceğini ortaya koydu.

          Birlikte ele alındığında, in vitro deneyler, PRGRC'nin mide kanseri üzerindeki, bağışıklığın düzenlenmesi ve apoptozun teşvik edilmesi dahil olmak üzere moleküler mekanizmalarını gösterdi; bu, sistem farmakolojisi yoluyla elde edilen sonuçları daha da doğruladı ve in silico tarama stratejisinin güvenilirliğini sağladı.

          Git: tartışma ve sonuç


          Mide kanseri, yüksek mortalite ve morbidite nedeniyle en yaygın kanserlerden biri haline gelmiştir. Klinik olarak, advers ilaç reaksiyonu, ilaç direnci ve kanser nüksü sıklıkla meydana gelir ve mide kanseri hastalarında kötü prognoza neden olur. Bu nedenle, yan etkileri düşük, güvenli ilaçların araştırılması gerekli ve acildir.

          Bu çalışmada, klinik uygulamada yaygın olarak kullanılan PRGRC'yi örnek olarak seçtik ve mide kanseri tedavisinde TCM formülünün sinerjistik farmakolojik mekanizmasını yorumlamak için sistem farmakolojisi yaklaşımını önerdik. İlk olarak, değerlendirme yöntemlerine dayalı olarak 83 aktif bileşen elde edildi ve 184 potansiyel hastalıkla ilgili hedef tahmin edildi. Sonuçlar, PRGRC'nin çoklu bileşiklerin ve çoklu hedeflerin özelliklerine sahip olduğunu gösterdi. Hem aktif bileşikler hem de CT analizi daha sonra PRGRC'deki çeşitli aktif bileşiklerin, naringenin ve luteolin dahil olmak üzere mide kanserinin tedavisi için zorunlu olduğunu doğruladı. Ayrıca PTGS2, NOS2, CASP3 ve BCL2 gibi bazı hedeflerin mide kanseri hücreleri üzerinde antiinflamatuar ve proapoptotik etkilere sahip olduğu doğrulanmıştır. Dahası, yol ve GOBP zenginleştirme analizi, TP analizi ve "mide kanseri yolu"nun entegre edilmesinin sonuçları, PRGRC'nin mide kanserini öncelikle inflamatuar yanıtı ve apoptozu modüle ederek tedavi ettiğini öne sürdü. Son olarak, in vitro sitotoksisite testi, naringenin ve luteolin'in mide kanseri hücreleri üzerinde bariz bir antiproliferatif etkiye sahip olduğunu göstermiştir. Ayrıca, naringenin ve luteolin'in belirgin bir antiinflamatuar etkiye sahip olduğunu ve mide kanseri hücrelerinin apoptozunu düzenlediğini western blot ve akış sitometrisi ile doğruladık.

          Özet olarak, sistem farmakolojisi yaklaşımı, PRGRC'nin mide kanseri için karmaşık moleküler mekanizmalarını ortaya çıkardı ve TCM'nin çok moleküllü ve çok hedefli sinerjistik etkilerini aydınlattı. Ayrıca bu strateji, yeni ilaçların akılcı keşfi için potansiyel bir yaklaşım sağladı. Yeni ilaçların geliştirilmesinde, ilgili hedeflerini ve hastalıklarını tahmin ederek bileşiklerin farmakolojik aktivitelerini belirlemeye çalışabiliriz. Bu yaklaşım, yeni ilaç geliştirme sürecini hızlandırdı ve TCM'nin modernizasyonunu destekledi.

          Git: Malzemeler ve yöntemler

          Moleküler veritabanı oluşturma


          PRGRC'de bulunan bileşikler, önceki çalışmalarımız 50 (TCMSP, http://lsp.nwu.edu.cn/ ) tarafından geliştirilen Geleneksel Çin Tıbbı Sistemleri Farmakoloji Veritabanından toplanmıştır. Aktif bileşiklerin taranması


          PRGRC oral bir formülasyondur ve etkinliklerini göstermek üzere hedef organlara ve dokulara ulaşmak için ADME sürecinden geçmelidir. Bu makalede, biyoaktif bileşiklerin 51 taranması için parametreler olarak OB ve DL özelliklerini kullandık . OB ve DL eşikleri sırasıyla %30 ve 0.18 olarak ayarlandı. İlaç hedefleri


          Hedefler genellikle vücuttaki hastalıkları tedavi etmek amacıyla farmakodinamik molekülleri tanıyan ve bağlayan biyoaktif makromoleküllerdir. Bu nedenle, hedef tahmini, mide kanseri ile ilişkili moleküler mekanizmaların ve ilaç etkilerinin aydınlatılmasında önemli bir rol oynar. Bu çalışmada, PRGRC'nin doğrudan ve dolaylı etkinlik hedeflerini sırasıyla WES ve SysDT algoritmaları aracılığıyla tahmin ettik.

          WES algoritması, bileşikler ve protein ligandları arasındaki ağırlıklı Tanimoto benzerliğini hesaplamak için kimyasal moleküler parmak izlerini ve Dragon parametrelerini kullandı ve ardından bileşiklerin ve protein ligandlarının Global Benzerliğini havuzlanmış benzerlikle tanımladı. Yeni bir araç olarak, elde edilen model, ortalama %85 hassasiyetle (SEN) bağlanmayı ve alıcı çalışma eğrilerinin (ROC, AUC) altındaki ortalama alanlarla %71 (SPE) ile bağlanmama modellerini tahmin etmede iyi performans gösterdi. %85,2 ve ortalama %77,5 uyum 14 .

          SysDT, büyük ölçekli kimyasal, genomik ve ilaç verilerinden gelen bilgileri entegre ederek ilaçları, hedefleri ve bunların etkileşimlerini modellemek için Random Forest (RF) ve Support Vector Machine (SVM) olmak üzere iki güçlü matematiksel araca dayanan bir şirket içi bilgisayar modelidir. Modelin genel doğruluğu %97,3, aktivasyon öngörüsünde %87,7 doğruluğu ve inhibisyon öngörüsünde %99,8 doğruluğu vardı. Daha fazla potansiyel bileşen yakalamak için, bu çalışma filtreleme kriterlerini RF değeri ≥ 0,7 veya SVM ≥ 0,8 olarak tanımladı .

          Mide kanseri ile ilişkili potansiyel hedefleri elde etmek için hastalık zenginleştirme analizi için yukarıda tahmin edilen hedefleri CTD veri tabanına (CTD, http://ctdbase.org/ ) eşledik. GO zenginleştirme ve hedeflerin analizi


          İlgili yolları ve yukarıda elde edilen hedeflerin biyolojik süreçlerini daha fazla araştırmak için hedefleri KEGG ( www.kegg.jp/kegg/kegg1.html ) 52 , 53 ve DAVID ( http://david. abcc.ncifcrf.gov ) veritabanı 54 . Yalnızca P değeri < 0,01 seçildi. Ağ ve yol yapımı ve analizi


          Bu çalışmada, mide kanseri tedavisinde PRGRC'nin moleküler mekanizmalarını doğrulamak adına, Cytoscape3.6.0 55 ile CT ağı ve TP ağı oluşturduk . Ağlarda, bileşikler, hedefler ve yollar düğümlerle temsil edildi ve düğümler arasındaki etkileşim kenarlarla temsil edildi. Ek olarak, ağdaki düğümleri değerlendirmek için önemli bir topoloji parametresi olan derece, Cytoscape3.6.0'ın Network Aalyzer eklentisi tarafından analiz edildi. Bir düğümün derecesi, düğümle ilişkili kenarların sayısıydı. PRGRC'nin bütünleştirici mekanizmalarını daha fazla kanıtlamak için, TP ağı ve CT ağının analizinden elde edilen anahtar yollar, mide kanserinin mevcut patolojik bilgilerine dayalı olarak bir "mide kanseri yolu" içinde birleştirildi. deneysel doğrulama


          örnek hazırlama


          Naringenin ve luteolin, Shanghai Yuanye Biological Technology Co., Ltd.'den (Şanghay, Çin) satın alınmıştır. Numuneler, 100 mM'lik bir konsantrasyonda bir stok çözelti elde etmek için DMSO içinde çözüldü ve daha sonra 4 °C'de saklandı. Son olarak ortama eklenen DMSO'nun seyreltme hacmi, DMSO'nun hücre canlılığı üzerinde hiçbir etkisinin olmamasını sağlamak için toplam hacmin %1'ini geçmedi.

          Hücre kültürü


          Fare makrofaj hücreleri RAW264.7, insan mide kanseri hücreleri SGC7901 ve AGS, Çin Bilimler Akademisi Şangay hücre bankasından satın alındı. RAW264.7 hücreleri, Dulbecco'nun %10 fetal bovin serumu (FBS) (Gibco BRL) ile değiştirilmiş kartal ortamında (DMEM) kültürlendi. SGC7901 ve AGS hücreleri, %10 FBS içeren RPMI-1640 ortamında kültürlendi. Tüm deney hücreleri , 37 °C'de %5 C02 içeren nemli bir atmosferde tutuldu .

          Hücre canlılığı deneyi


          Hücre canlılığı, CCK-8 tahlili (BestBio) ile tahmin edildi. RAW264.7, SGC-7901 ve AGS hücreleri, 24 saat boyunca 8 x 10⁴ hücre/ml yoğunlukta 96 oyuklu plakaya ekildi ve daha sonra hücreler, belirtilen çeşitli konsantrasyonlarda naringenin veya luteolin ile veya onsuz muamele edildi ve sonra hücre canlılığı, 24 saat sonra CCK-8 ile ölçüldü. Belirtilen çeşitli naringenin veya luteolin konsantrasyonları sırasıyla 10, 50 ve 100 uM veya 5, 10 ve 15 uM idi.

          Enflamasyon modeli


          RAW264.7 hücreleri (1.5 x 10⁶ ) , 24 saat boyunca 100 mm çapındaki tabaklarda kültürlendi ve daha sonra 1 ug/ml LPS (Sigma, E. coli ) ile muamele edilmeden önce 2 saat boyunca belirtilen çeşitli konsantrasyonlarda naringenin veya luteolin ile veya bunlar olmadan muamele edildi. (O111:B4)), bundan sonra hücreler, 18 saat boyunca 37 °C'de % 5 C02 /%95 O2 ile nemlendirilmiş bir inkübatörde kültürlendi. Hücreler, enflamatuar mediatörlerin tespiti olarak kullanılan western blot için kültürün sonunda toplandı.

          batı lekesi


          Protein numuneleri, %10 poliakrilamid jel üzerinde SDS-PAGE ile ayrıldı ve PVDF membranlarına aktarıldı. Daha sonra zarlar, oda sıcaklığında %3 sığır serum albümini içinde bloke edildi ve gece boyunca primer antikor, NOS2, PTGS2, BCL2, RELA, CASP3, bölünmüş-CASP3 ve bölünmüş-PARP1 (Abcam) içine yerleştirildi. Lekeler daha sonra, ECL kemilüminesans saptama kiti (Bio-Rad Laboratories) ile geliştirilmeden önce ikincil antikorda 1 saat süreyle inkübe edildi. Orijinal lekelerin görüntüleri, Image Lab yazılımı ile elde edildi.

          Akış sitometrisi analizi


          Hücre apoptozisi, üreticinin talimatlarına göre bir FITC Annexin V apoptoz kiti (BD Bioscience) kullanılarak belirlendi. Çeşitli konsantrasyonlarda naringenin ve luteolin ile 24 saat muamele edildikten sonra, tripsin kullanılarak hücre süspansiyonu hazırlandı ve 1000 rpm'de 3 dakika santrifüjlendi, ardından buz gibi soğuk PBS ile durulandı. Hücreler daha sonra 1 x 10⁵ hücre/ml'lik bir konsantrasyonda bağlama tamponunda yeniden süspanse edildi . Hücreler, bir akış sitometresi (NovoCyte 3130, ACEA) ile analiz edilmeden önce karanlıkta 15 dakika annexin V-FITC ve 5 dakika propidium (PI) ile boyandı. istatistiksel analiz


          İstatistiksel analiz GraphPad Prism 8.0 (Graph Pad Software Inc) ile gerçekleştirilmiştir. Tüm veriler, ortalama ± standart hata olarak sunuldu ve aynı sonuçla en az iki veya üç bağımsız deney tekrarlandı.


          Git: Ek bilgi


          Ek Şekiller. (7,1M, docx)
          Ek Tablolar. (413K, docx)


          Git: teşekkürler


          Bu çalışma, Çin Ulusal Doğa Bilimleri Vakfı (NO. U1603285), Çin Ulusal Bilim ve Teknoloji Büyük Projesi (Grant No. 2019ZX09201004-001) ve Shaanxi Eyaleti Bilim ve Teknoloji Departmanının Ana Projesi (NO. 2018JZ3007) tarafından desteklenmiştir. ).

          Git: Yazar Katkıları


          LZ, YX ve RY bu çalışmaya eşit katkıda bulunmuştur. Çalışmayı YW, WX ve JL tasarladı ve tasarladı. RY ve SM veri analizi gerçekleştirdi. LZ, YX ve SW deneyler yaptı ve veri topladı. LZ, YX, RY, WX ve YW makaleyi yazdı veya yazılmasına katkıda bulundu. WX deneysel platform ve mali destek sağladı.

          Git: Veri kullanılabilirliği


          Mevcut çalışma sırasında kullanılan ve/veya analiz edilen veri kümeleri, makul talepler üzerine ilgili yazardan temin edilebilir.

          Git: Rekabet eden çıkarlar


          Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

          Git: Dipnotlar


          yayıncının notu

          Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


          Bu yazarlar eşit katkıda bulundu: Lulu Zhang, Yue Xiao ve Ruijie Yang.


          Git: Katılımcı Bilgileri


          Jianling Liu, E-posta: moc.621@ljl3002ljl .

          Wei Xiao, E-posta: moc.361@noinak_wx .

          Yonghua Wang, E-posta: nc.ude.uwn@gnawhy .

          Git: Ek bilgi


          Çevrimiçi sürüm, 10.1038/s41598-021-01535-5 adresinde bulunan ek materyal içerir.

          Git: Referanslar

          1. Sung H ve ark. Küresel kanser istatistikleri 2020: GLOBOCAN, 185 ülkede 36 kanser için dünya çapında insidans ve mortalite tahminleri. CA Kanser J. Clin. 2021; 71 (3):209–249. [ PubMed ] [ Google Akademik ]
          2. He P ve ark. Hesperetin, PTEN ekspresyonunu yukarı doğru düzenleyerek in vitro ve in vivo olarak mide kanserinin indüklenmiş apoptozu olan cisplatini teşvik eder. Ön. Eczane. 2020; 11 :1326. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          3. Huang WJ, et al. Mide kanserinin çoklu ilaç direnci: Mekanizmalar ve Çin tıbbı tersine çeviren ajanlar. Kanser Yönet. Res. 2020; 12 :12385. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          4. Cui YG ve ark. Zencefil Pinellia'nın ekstraksiyon işlemi ve insan mide kanseri SGC7901 hücreleri üzerindeki anti-proliferatif ve proapoptotik aktiviteleri. Biyomed. Res. 2016; 27 (1):0970. [ Google Akademik ]
          5. Yang X ve ark. Fuzheng Jiedu Xiaoji formülasyonu, AKT/CyclinD1/p21/p27 yolunu hedefleyerek hastalarda hepatoselüler karsinomun ilerlemesini engeller. Bitki ilacı. 2021; 87 :153575. [ PubMed ] [ Google Akademik ]
          6. Zhang Q, et al. Apoptozu indükleyerek akciğer kanserine karşı Rheum palmatum L.'nin antikanser mekanizmasını ve potansiyel aktif bileşenlerini araştırmak için bir ağ farmakolojisi yaklaşımı . Ön. Eczane. 2020 doi: 10.3389/fphar.2020.528308. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          7. Liu JH ve ark. Radix Aucklandiae bitkisel preparatının anti-enflamatuar etkileri, farelerde 5-fluorourasil tarafından indüklenen bağırsak mukozitini iyileştirir. J. Ethnopharmacol. 2021; 271 :113912. [ PubMed ] [ Google Akademik ]
          8. Kim MA, et al. Gentiana scabra Bunge'nin biyodönüşümü , MAP kinazları ve NF-κB yolu yoluyla RAW 264.7 hücrelerinde anti-inflamatuar etkiyi arttırır. J. Uygulama Biol. kimya 2019; 62 (1):39–50. [ Google Akademik ]
          9. Gao M, Yang W. Citrus aurantium L.'nin gastrointestinal hareketlilik ve mide kanseri hücresi çoğalması üzerindeki etkileri. Kanser Biother. Radyofarm. 2020 doi: 10.1089/cbr.2020.4267. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          10. SuX ve ark. Sistem farmakolojisi, Hedyotis diffusa Willd için anti-küçük hücreli olmayan akciğer kanseri mekanizmasını ortaya çıkarıyor . Biyomed. Eczacı. 2019; 109 :969–984. [ PubMed ] [ Google Akademik ]
          11. Liu J ve ark. Küçük hücreli dışı akciğer kanseri için Scutellaria barbata D. Don'un moleküler mekanizmalarını araştırmak için yeni bir sistem farmakoloji yöntemi . Ön. Eczacılık 2018; 9 :1473. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          12. Xu X ve ark. İnsan oral biyoyararlanımının tahmini için yeni bir kemometrik yöntem. Int. J. Mol. bilim 2012; 13 (6):6964–6982. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          13. Yamanishi Y, et al. Entegre bir çerçevede kimyasal, genomik ve farmakolojik verilerden ilaç-hedef etkileşimi tahmini. Biyoinformatik. 2010; 26 (12):i246–i254. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          14. Zheng C, et al. İlacın yeniden konumlandırılması ve keşfi için büyük ölçekli doğrudan hedefleme. bilim 2015 ; 5 (1):1–10. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          15. Yu H ve ark. Kimyasal, genomik ve farmakolojik verilerden çoklu ilaç-hedef etkileşimlerinin sistematik bir tahmini. PLoS BİR. 2012; 7 (5):e37608. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          16. García-Murria MJ, et al. Viral Bcl2'lerin transmembran alanı, hücresel apoptozu kontrol etmek için konakçı Bcl2 proteinleri ile etkileşime girer. Nat. komün. 2020; 11 (1):1–15. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          17. Jiang M, et al. Kanserde apoptoz ve piroptoz arasında bir geçiş olarak kaspaz-3 / GSDME sinyal yolu. Hücre Ölümü Keşfi 2020; 6 (1):1–11. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          18. Srinivasan K. Mutfak baharatlarının ve bunların biyoaktif maddelerinin iltihap önleyici etkileri. Gıda Rev. 2020 doi: 10.1080/87559129.2020.1839761. [ CrossRef ] [ Google Akademik ]
          19. Kanehisa M, et al. KEGG: Virüsleri ve hücresel organizmaları entegre etmek. Nükleik Asitler Res. 2021; 49 (D1)545–D551. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          20. Chen K ve ark. Gastrite karşı formül 1'i ağırlaştırmanın mekanizmalarını ve moleküler hedeflerini ortaya çıkarmak: Ağ farmakolojisini GEO veri tabanıyla birleştirmek. BioMed Arş. Int. 2021; 2021 :1–18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          21. Pan B, et al. Ecliptae bitkisinin hepatoselüler karsinom üzerindeki hepatoprotektif etkilerinin altında yatan farmakolojik mekanizmalar. Kanıta Dayalı Tamamlayıcı. Altern. Med. 2021; 2021 :1–17. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          22. Hu Z ve ark. Gentiopikrosid, karşılıklı MAPK/Akt sinyal yolları yoluyla rahim ağzı kanserinde hücre büyümesini ve göçünü inhibe eder. Nutr. Yengeç Burcu. 2021; 73 (8):1459–1470. [ PubMed ] [ Google Akademik ]
          23. Liu Y, et al. PI3K/AKT sinyalinin ROS düzenlemesi yoluyla inhibisyonu, Rhein kaynaklı apoptozda ve pankreas kanseri hücrelerinde oksaliplatin duyarlılığının arttırılmasında rol oynar. Int. J. Biol. bilim 2021; 17 (2):589. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          24. Ding S, et al. Diyabetik nefropatiyi tedavi etmek için Huangqi Gegen kaynatma işleminin altında yatan mekanizmayı keşfetmek için ağ farmakolojisine ve moleküler yerleştirmeye dayalıdır. Kanıta Dayalı Tamamlayıcı. Altern. Med. 2021; 2021 :1–14. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          25. Lee HS, Jeong GS. Kaempferolün atopik dermatit üzerindeki terapötik etkisi, çoklu ilaç direnciyle ilişkili protein 1 ile etkileşim yoluyla T hücresi aktivitesinin zayıflaması yoluyla. Br. J. Pharmacol. 2021; 178 (8):1772–1788. [ PubMed ] [ Google Akademik ]
          26. Tian C ve ark. Luteolin, kaempferol, apigenin ve quercetin'in antiinflamatuar ve antioksidan aktivitelerinin araştırılması. Afr. J.Bot. 2021; 137 :257–264. [ Google Akademik ]
          27. Costa DL, et al. Hem oksijenaz-1 inhibisyonu, Mycobacterium tuberculosis enfeksiyonunun IFNγ- ve NOS2 aracılı kontrolünü destekler . Mukozal İmmunol. 2021; 14 (1):253–266. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          28. He R, et al. PK-15 ve NPTr hücrelerinde Haemophilus parasuis tarafından indüklenen inflamatuar yanıtlar sırasında Wnt/β-katenin ve NF-κB sinyal yolu arasındaki COX-2 aracılı çapraz konuşma. Dev. karşılaştırın. immünol. 2020; 105 :103588. [ PubMed ] [ Google Akademik ]
          29. Ma M, et al. Düşük doz naltrekson, kolorektal kanser ilerlemesini inhibe eder ve M1 tipi makrofajları artırarak ve Bax/Bcl-2/kaspaz-3/PARP yolunu aktive ederek apoptozu teşvik eder. Int. İmmünofarmakol. 2020; 83 :106388. [ PubMed ] [ Google Akademik ]
          30. Li W, et al. Eriodictyol proliferasyonu, metastazı inhibe eder ve PI3K/Akt/NF-κB sinyal yolu yoluyla glioma hücrelerinin apoptozunu indükler. Ön. Eczane. 2020; 11 :114. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          31. Zhao L, et al. Hippophae rhamnoides polisakkaritleri, TLR4/NF-κB sinyal yolunu inhibe ederek IPEC-J2 hücrelerini LPS'nin neden olduğu iltihaplanma, apoptoz ve in vitro bariyer işlev bozukluğundan korur. Int. J. Biol. Makromol. 2020; 155 :1202–1215. [ PubMed ] [ Google Akademik ]
          32. Li LF, et al. Rubinoboletus ballouii polisakkaritleri, NF-κB yolu yoluyla toll benzeri reseptör-4 yoluyla immün sistemi uyarıcı aktiviteler sergiledi. fitoter. Res. 2021; 35 (4):2108–2118. [ PubMed ] [ Google Akademik ]
          33. Chen X, et al. Kadmiyum maruziyeti oksidatif stresi, nekroptozu, Th1/Th2 dengesizliğini tetikler ve domuz ince bağırsağında TNF-α/NF-κB yolu yoluyla iltihaplanmayı destekler. J. Hazard. Anne. 2021; 421 :126704. [ PubMed ] [ Google Akademik ]
          34. Fu T, et al. ASB16-AS1, NF-κB yolunu aktive etmek ve mide kanserinin proliferasyonunu, sapını ve sisplatin direncini desteklemek için TRIM37'yi yukarı regüle etti ve fosforile etti. Mide kanseri. 2021; 24 (1):45–59. [ PubMed ] [ Google Akademik ]
          35. Li LB, Fang TY, Xu WJ. Oral glutamin, bağışıklık fonksiyonunu iyileştirerek ve apoptoz yolunu aktive ederek mide kanseri taşıyan farelerin tümör büyümesini inhibe eder. Doku Hücresi. 2021; 71 :101508. [ PubMed ] [ Google Akademik ]
          36. Zhang H, et al. İntratümöral IL-10 üreten makrofajlarda zayıf klinik sonuçlar ve immüno-kaçınma yapısı mide kanseri hastalarını zenginleştirdi. Ann. cerrahi 2021 doi: 10.1097/SLA.0000000000004037. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          37. Suganuma M, et al. Helicobacter pylori tarafından salgılanan TNF-α-indükleyici proteinin mide kanserinde bir tümör promotörü olarak rolü ve ortaya çıkan önleyici stratejiler. toksinler. 2021; 13 (3):181. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          38. Carneiro BA, El-Deiry WS. Kanser tedavisinde hedeflenen apoptoz. Nat. Rahip Clin. Oncol. 2020; 17 (7):395–417. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          39. Lee H, Lim JW, Kim H. Astaksantinin Helicobacter pylori ile enfekte gastrik epitelyal hücre hattı AGS'de otofajinin aktivasyonu ve apoptozun inhibisyonu üzerindeki etkisi . Besinler. 2020; 12 (6):1750. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          40. He Y, et al. Helicobacter pylori lizatına sürekli maruz kalma , gastrik epitel hücrelerinin apoptozu ve otofajisini inhibe eder. Ön. Oncol. 2020; 10 :2319. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          41. Kishk RM, et al. Helicobacter pylori virülans genleri cagA ve vacA'nın genotiplenmesi: Bölgesel ve Ulusal Çalışma. Int. J. Mikrobiyoloji. 2021; 2021 :1–7. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          42. Lu SY, et al. Mide mukozasında otofaji: ikili rol ve potansiyel terapötik hedef. BioMed Arş. Int. 2021; 2021 : 1–8. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          43. Muthusami S, et al. Kolorektal kanser gelişiminde enflamasyonun rolü. Endokrin Metab. Bağışıklık Bozukluğu İlaç Hedefleri. 2021; 21 (1):77–90. [ PubMed ] [ Google Akademik ]
          44. Jiang L, et al. Bcl2 ile ilişkili atanojen 4, PI3K/AKT/NF-κB/ZEB1 eksenini aktive ederek mide kanseri hücrelerinin istilasını ve metastazını destekler. kanser Letonya 2021; 520 :409. [ PubMed ] [ Google Akademik ]
          45. Zhou W, et al. Yakı ve akupunkturun kronik atrofik gastritli sıçanlarda gastrik mukozal hücre apoptozu ve NF-κB, Bcl-2 ekspresyonu üzerindeki etkisi. akupunktur. Res. 2021; 46 (4):284–288. [ PubMed ] [ Google Akademik ]
          46. ​​Zhu F, et al. Epigallocatechin gallate, farelerde PI3K/Akt/mTOR yolu yoluyla MNNG'nin neden olduğu mide karsinomunun prekanseröz lezyonlarına karşı koruma sağlar. Kanıta Dayalı Tamamlayıcı. Altern. Med. 2021; 2021 :1–10. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          47. Li Y, et al. Radix tetrastigma, küçük hücreli dışı akciğer kanserini Bax/Bcl-2/Caspase-9/Caspase-3 yolu ile inhibe eder. Nutr. Yengeç Burcu. 2021 doi: 10.1080/01635581.2021.1881569. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          48. Mokhtari Sangdehi SR, Hajizadeh Moghaddam A, Ranjbar M. Serebral iskemi/reperfüzyon hasarının ardından hipokampal kaspaz-3 ve Bcl-2 ekspresyonu üzerinde silimarin yüklü kitosan nanopartiküllerin anti-apoptotik etkisi. Int. J. Neurosci. 2020 doi: 10.1080/00207454.2020.1860971. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          49. Almahli H, et al. Akciğer kanserinde apoptozu indükleyen mekanizma ile yeni sentezlenmiş ftalazinon bazlı PARP-1 inhibitörlerinin geliştirilmesi. Biorg. kimya 2018; 77 :443–456. [ PubMed ] [ Google Akademik ]
          50. Ru J ve ark. TCMSP: Bitkisel ilaçlardan ilaç keşfi için sistem farmakolojisi veritabanı. J. Cheminform. 2014; 6 (1):1–6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          51. Zhang W, et al. İlaç keşfinde geleneksel Çin tıbbının etki mekanizmalarının araştırılması için sistem farmakolojisi. Ön. Eczane. 2019; 10 :743. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          52. Kanehisa M. Hücresel organizmaların kökenini ve evrimini anlamaya doğru. Protein Bilimi 2019; 28 (11):1947–1951. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          53. Kanehisa M, Goto S. KEGG: Kyoto genler ve genomlar ansiklopedisi. Nükleik Asitler Res. 2000; 28 (1):27–30. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          54. Liu J ve ark. TCM'nin sinerjisinin sistem farmakoloji analizi: Safran formülü kullanan bir örnek. bilim 2018 ; 8 (1):1–11. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          55. Zhang X, et al. Sistem farmakolojisi, küçük hücreli dışı akciğer kanseri için Rhodiola rosea L.'nin sinerjik he
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6
            ÇENTİYAN İle Anoreksiya Nervoza, Manken Hastalığı, Blumia Ve Adet Görememe

            Gentiana lutea özütlerinin UV kaynaklı DNA hasarını azaltmadaki rolü

            Stefana Cvetkoviç 1, Stefana Vuletic 1, Jovana Vunduk 2, Anita Klaus 3, Dragana Mitić-Ćulafić 1, Biljana Nikoliç 1
            üyelikler çöküş üyelikler
            • 1Biyoloji Fakültesi, Belgrad Üniversitesi, Studentski trg 16, 11000 Belgrad, Sırbistan.
            • 2Genel ve Fiziksel Kimya Enstitüsü, Studentski trg 12/V, 11000 Belgrad, Sırbistan.
            • 3Ziraat Fakültesi, Gıda Teknolojisi ve Biyokimya Enstitüsü, Belgrad Üniversitesi, Nemanjina 6, 11080 Belgrad, Sırbistan.
            • PMID: 35253882
            • DOI: 10.1093/mutage/geac006
            Soyut


            Ultraviyole (UV) radyasyonu, esas olarak doğrudan pirimidin dimerleri oluşumu ve reaktif oksijen türlerinin oluşumu yoluyla DNA hasarına neden olabilir, bu da kanser dahil cilt bozukluklarına yol açabilir. Buna göre doğal antijenotoksinlerin ve/veya antioksidanların kullanımı insan sağlığının korunmasına katkı sağlayabilir. Bitkilerin her ikisinden de zengin olduğu göz önüne alındığında, bu çalışmanın amacı, farmakopelerde ve geleneksel tıpta iyi bilinen sarı centiyana'nın (Gentiana lutea) UV koruyucu ve antioksidan özelliklerini araştırmaktı. Test edilen ekstraktlar, in vitro kültür bitkilerinin kök ve sürgünlerinden elde edildi. UVC, UVA ve ekstraktların yanı sıra ekstraktların genotoksik özelliklerinin ön taraması antijenotoksisite, normal fetal akciğer fibroblastı (MRC-5) ve insan melanom hücreleri (Hs 294T) üzerinde alkalin comet testi uygulanarak tahmin edildi. Antioksidan potansiyeli, demir iyonlarını şelatlayan ferrik indirgeyici antioksidan gücü ve kuprik indirgeyici antioksidan kapasite deneylerinde test edildi. Kök ekstraktının MRC-5 hücreleri üzerinde orta düzeyde DNA'ya zarar verme potansiyeli ve her iki hücre hattında sürgün ekstraktının yüksek genotoksisitesini ortaya koyan genotoksisite testi, antijenotoksisite deneyinde kullanılabilecek genotoksik olmayan konsantrasyonlara işaret etti. UVC ve UVA için sırasıyla 63 ve 3 J/cm2'lik dozlar, kayda değer sitotoksisite olmadan yeterli DNA hasarını indükledikleri için antijenotoksisite çalışması için belirlenmiştir. Antigenotoksisite sonuçları, her iki ekstraktın sırasıyla Hs 294T ve MRC-5 hücrelerinde UVC'ye (en yüksek inhibisyonlar %58 ve %47) ve UVA'ya (en yüksek inhibisyonlar %69 ve %60) karşı güçlü koruyucu etkisini ortaya çıkardı. Antioksidatif özelliklerin incelenmesi, sürgün ekstraktının daha güçlü aktivitesini göstermiştir. Elde edilen sonuçların cesaret verici olduğu kanıtlanmıştır, ancak Gentiana lutea ekstraktlarının UV koruyucu rolünün ve altında yatan moleküler mekanizmaların daha fazla araştırılması önerilir.

            Anahtar Kelimeler: Gentiana lutea; UV ışını; antijenotoksisite; antioksidan aktivite.

            © Yazar(lar) 2022. Birleşik Krallık Çevre Mutajen Topluluğu adına Oxford University Press tarafından yayınlanmıştır. Tüm hakları Saklıdır. İzinler için lütfen e-posta gönderin: journals.permissions@oup.com.
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7
              ÇENTİYAN İle İştahsızlık, Anoreksiya Nervoza, Bulimia Ve Faranjit


              Gentiana lutea, endotelyal inflamasyonu ve düz kas hücresi göçünü önleyerek anti-aterosklerotik etkiler gösterir.

              $ Kesavan 1, S Chandel 1, S Upadhyay 1, R Bendre 1, R Ganugula 2, UR Potunuru 1, H Giri 1, G Sahu 1, P Uday Kumar 2, G Bhanuprakash Reddy 2, G Joksic 3, ak bera 1, Madhulika Dixit 4
              üyelikler çöküş üyelikler
              • 1Biyoteknoloji Bölümü, Bhupat ve Jyoti Mehta Biyobilimler Okulu ve Biyomühendislik Binası, Hindistan Teknoloji Enstitüsü Madras, Chennai 600036, Hindistan.
              • 2Ulusal Beslenme Enstitüsü, Haydarabad, Hindistan.
              • 3Fiziksel Kimya Bölümü, VINCA Nükleer Bilimler Enstitüsü, Belgrad, Sırbistan.
              • 4Biyoteknoloji Bölümü, Bhupat ve Jyoti Mehta Biyobilimler Okulu ve Biyomühendislik Binası, Hindistan Teknoloji Enstitüsü Madras, Chennai 600036, Hindistan. Elektronik adres: mdixit@iitm.ac.in.
              • PMID: 26868432
              • DOI: 10.1016/j.numecd.2015.12.016
              Soyut


              Arka plan ve amaçlar: Çalışmalar, Gentiana lutea (GL) ve onun bileşeni olan isovitexin'in anti-aterosklerotik özellikler gösterebileceğini düşündürmektedir. Bu çalışmada, streptozotosin (STZ) ile indüklenen diyabetik sıçanlarda endotelyal enflamasyon, düz kas hücresi migasyonu ve aterosklerozun başlangıcı ve ilerlemesi üzerindeki GL sulu kök ekstresi ve izoviteksinin koruyucu mekanizmasını araştırmayı amaçladık.

              Yöntemler ve sonuçlar: Sonuçlarımız, hem GL ekstraktının hem de izoviteksinin, insan göbek damarı endotel hücrelerinde (HUVEC'ler) ve sıçan aort düz kas hücrelerinde (RASMC'ler), TNF-alfa ve trombosit türevli büyüme faktörü-BB'yi takiben lökosit adezyonunu ve reaktif oksijen türlerinin oluşumunu bloke ettiğini göstermektedir ( sırasıyla PDGF-BB) zorlukları. Hem ekstrakt hem de isovitexin, HUVEC'lerde ICAM-1 ve VCAM-1'in TNF-a kaynaklı ekspresyonunu bloke etti. PDGF-BB'nin neden olduğu RASMC'lerin göçü ve fosfolipaz C-y aktivasyonu da GL özütü ve izoviteksin tarafından iptal edildi. Fura-2 tabanlı oranmetrik ölçümler, hem özütün hem de izoviteksinin, RASMC'lerde PDGF-BB aracılı hücre içi kalsiyum artışını engellediğini gösterdi. STZ fareleri için düzenli diyetin %2 GL kök tozu ile desteklenmesi, kandaki toplam kolesterolü azalttı. Oil Red O boyaması, GL ile tedaviden sonra diyabetik hayvanların aort duvarında lipid birikiminin azaldığını gösterdi. Diyabetik sıçanların aort segmentinde medial kalınlık ve kollajen birikimi de takviye üzerine azaldı. İmmünohistokimya, GL tedavisini takiben diyabetik sıçanların aort segmentlerinde vasküler hücre adezyon molekülü-1 (VCAM-1), indüklenebilir nitrik oksit sentaz (iNOS) ve vasküler endotelyal kaderin (VE-kadherin) ekspresyonunun azaldığını gösterdi.

              Sonuçlar: Bu nedenle, sonuçlarımız GL kök ekstresi/tozunun ve isoviteksinin anti-aterosklerotik aktiviteler sergilediğini desteklemektedir.

              Anahtar Kelimeler: Ateroskleroz; endotel iltihabı; Gentiana lutea; İzoviteksin; PLC-γ; ROS; Düz kas hücresi.

              Telif hakkı © 2016 İtalyan Diyabetoloji Derneği, İtalyan Ateroskleroz Çalışmaları Derneği, İtalyan İnsan Beslenmesi Derneği ve Federico II Üniversitesi Klinik Tıp ve Cerrahi Bölümü. Elsevier BV tarafından yayınlandı Tüm hakları saklıdır.
              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap


              • #8
                ÇENTİYAN İle İştahsızlık


                Vasküler Düz Kas Hücre Proliferasyonunun Gentiana lutea Kök Ekstraktları ile İnhibisyonu

                Rushendhiran Kesavan , 1 Uma Rani Potunuru , 1 Branislav Nastasijević , 2 Avaneesh T , 1 Gordana Joksić , 2 ve Madhulika Dixit 1 , *
                Shilpa J. Buch, Editör
                Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                Git: Soyut


                Gentianaceae familyasına ait çiçekli bitkiler familyasına ait Gentiana lutea , faydalı mide-bağırsak ve anti-enflamatuar özellikleri nedeniyle geleneksel Sırp tıbbında rutin olarak kullanılmaktadır. Çalışmanın amacı, Gentiana lutea'nın sulu kök ekstraktlarınıngentiopikrosid, gentisin, bellidifolin-8-O-glucoside, demethylbellidifolin-8-O-glucoside, isovitexin, swertiamarin ve amarogentinden oluşan PDGF-BB'ye yanıt olarak aort düz kas hücrelerinin çoğalmasını önler. Hücre proliferasyonu ve hücre döngüsü analizi, sırasıyla alamar mavisi tahlili ve propidyum iyodür etiketlemesine dayalı olarak gerçekleştirilmiştir. Sıçan aortik düz kas hücrelerinin (RASMC'ler) birincil kültürlerinde, PDGF-BB (20 ng/ml), hücre proliferasyonunda iki kat artışa neden oldu ve bu, kök ekstresi (1 mg/ml) tarafından önemli ölçüde bloke edildi. Kök ekstresi ayrıca PDGF'ye yanıt olarak senkronize hücrelerin S-fazı girişini de engelledi. Ayrıca PDGF-BB, ERK1/2 aktivasyonunu indükledi ve bunun sonucunda hücresel nitrik oksit (NO) seviyelerindeki artış da ekstrakt tarafından bloke edildi. Ekstraktın bu etkileri, iNOS, siklin D1 ve çoğalan hücre nükleer antijeninin (PCNA) PDGF-BB ile indüklenen ekspresyonunun bloke edilmesinden kaynaklanmaktadır. Ekstre bileşenlerinin AutoDock4 kullanılarak yukarı akış ERK1/2 aktive edici kinaz olan MEK1 üzerindeki yerleştirme analizi, izoviteksinin MEK1'in inhibitör bağlanma bölgesine olası bir şekilde bağlandığını gösterdi. Saflaştırılmış isovitexin ile gerçekleştirilen deneyler, hücre kültüründe PDGF kaynaklı ERK1/2 aktivasyonunu ve RASMC'lerin çoğalmasını başarılı bir şekilde bloke ettiğini gösterdi. Böylece, Saflaştırılmış isovitexin ile gerçekleştirilen deneyler, hücre kültüründe PDGF kaynaklı ERK1/2 aktivasyonunu ve RASMC'lerin çoğalmasını başarılı bir şekilde bloke ettiğini gösterdi. Böylece, Saflaştırılmış isovitexin ile gerçekleştirilen deneyler, hücre kültüründe PDGF kaynaklı ERK1/2 aktivasyonunu ve RASMC'lerin çoğalmasını başarılı bir şekilde bloke ettiğini gösterdi. Böylece,Gentiana lutea , aterosklerozun önlenmesi ve tedavisi için yeni adaylar sağlayabilir.

                Git: Giriş


                Anjiyoplasti sonrası ateroskleroz ve neo-intimal kalınlaşmanın patogenezi, düz kas hücrelerinin (SMC'ler) medyadan kan damarlarının lümenine aşırı göçünü ve çoğalmasını içerir. Temel fibroblast büyüme faktörü (bFGF) ve trombosit kaynaklı büyüme faktörü (PDGF)-BB gibi çeşitli büyüme faktörlerinin artan ekspresyonu, aterom oluşumuna katkıda bulunur [1] . Bu agonistler, PI-3kinaz ve/veya mitojenle aktive olan protein kinaz (MAPK) yolaklarını aktive ederek vasküler düz kas hücrelerinin migrasyonunu ve proliferasyonunu teşvik ederek plakta müteakip birikimlerine yol açar [2] , [3] .

                Bitki kaynaklı özler, dünya çapında geleneksel tıpta yaygın olarak kullanılmaktadır. Flavonoidler ve ksantonlar açısından zengin olan bu fitokimyasallar, hepato- veya nöro-toksisiteye karşı koruma sağlayarak yararlı sağlık etkileri sergilerler [4] . Örneğin, Gentianaecae ailesinin üyeleri Sırp ve Peru halk ilaçlarında sindirim bozukluklarını tedavi etmek için kullanılmaktadır. Benzer şekilde, Gentianaecae familyasına ait Swertia bitkileri de antiinflamatuar özellikleri nedeniyle Asya tıbbında kullanılmaktadır [5] , [6] . Ek olarak, G lutea ve G austriaca ekstraktlarından elde edilen ksantonlar ve glukozitler radyo-koruyucu özelliklere sahiptir [7] – [9]. Bu ekstraktların aktif ilkeleri sırasıyla gentiopicrosid, amarogentin ve swertiamarin gibi acı tat veren sekoiridoidleri ve sırasıyla isovitexin ve izogentisin gibi flavonoidler ve ksantonları içerir [10] , [11] . Ticari olarak temin edilebilen birkaç G lutea ekstraktının analizi, içlerinde en bol bulunan bileşiğin gentiopikriosid (%4.46-9.53) olduğunu, ardından swertiamarin ve ksanton glikozitlerin geldiğini, gentisin ve izogentisin ise çok daha düşük konsantrasyonlarda (%0.02-0.11) görüldüğünü göstermiştir [10 ] . Saflaştırılmış izogentisin ile yapılan çalışma, endotel hücrelerini sigara dumanının neden olduğu hücre ölümünden koruduğunu [12] , gentiopikriosidin ise düz kas gevşetici etkiler sergilediğini göstermiştir.[13] . Dolayısıyla bu çalışmalar, Gentiana türlerinin yararlı kardiyovasküler etkilere sahip olabileceğini, ancak bu bileşikler tarafından kullanılan moleküler mekanizmaların şu anda tam olarak anlaşılamadığını göstermektedir. Bu çalışmada, sıçan aortik düz kas hücrelerinin (RASMC'ler) birincil kültürlerinin PDGF-BB ile indüklenen proliferasyonu üzerindeki G lutea kökü ekstraktının rolünü araştırdık. Ek olarak, G lutea ekstraktının PDGF-BB ile indüklenen hücre döngüsü ilerlemesi ve ERK1/2 aktivasyonu ve iNOS ekspresyonunu içeren sinyal iletimi üzerindeki etkilerini inceledik .

                Git: Malzemeler ve yöntemler

                2.1 Kullanılan Malzemeler


                Penisilin ve streptomisin içeren DMEM-F12 ortamı ve antibiyotik solüsyonu HiMedia Labs, Mumbai, Hindistan'dan alınmıştır. Güney Amerika menşeli fetal sığır serumu GIBCO, Invitrogen, NY, ABD'den alınmıştır. eNOS, ERK1/2, PDGFR-p, IKKa, iNOS, siklinD1 ve PCNA'nın fosfo- ve toplam formlarına karşı antikorlar, Cell Signaling Technology Inc., Beverly MA, ABD'den alınmıştır. EKR1/2 aktivasyon inhibitörü (328000), Calbiochem, Inc. La Jolla, ABD'dendi. PDGF-BB, EGF, bFGF, İnsülin, Elastaz, Kolajenaz, Tripsin inhibitörü, iNOS PCR primerleri, L-arginin, Diaminofloresein –2 Diasetat (DAF2-DA), Alamar mavisi reaktifi, propidyum iyodür, NOS inhibitörü L-NAME ve tüm diğer kuru laboratuvar kimyasalları Sigma Aldrich, St. Louis, MO, ABD'dendi. HPLC dereceli asetonitril ve metanol, JTBaker'den (Deventer, Hollanda) alınmıştır.

                2.2 Bitki Materyali ve Ekstrakt Hazırlama


                Gentiana lutea bitki kökleri, Institute of Medicinal Plant Research “Dr. Josif Pancic”, Belgrad, Sırbistan. Sulu kök ekstraktları, centiyana köklerinin suda (1∶20, m/V oranında) 10 dakika kaynatılmasıyla hazırlandı, ardından daha önce tarif edildiği gibi 0.45 µm filtrelerden (Millipore Co. Ltd) süzüldü [14] , [15] . Dondurulmuş ekstraktlar liyofilize edildi ve kuru bir yerde sonraki analizlere kadar numune tüplerinde saklandı. Deney sırasında özler, steril damıtılmış su (10 mg/ml'lik bir konsantrasyonda) içinde sulandırıldı ve daha fazla kullanım için 0.22 um filtreden süzüldü.

                2.3 Düz Kas Hücrelerinin İzolasyonu ve Kültürü


                100-150 g ağırlığındaki erkek Wistar fareleri, Chennai'deki Kings Enstitüsünden temin edildi. Aort düz kas hücrelerinin izolasyonu ve kültürü için kullanılan protokol, Hindistan Tıbbi Araştırma Konseyi, Hindistan Hükümeti yönergelerine uygun olarak Hindistan Teknoloji Enstitüsü Madras'taki Kurumsal Hayvan Etik Komitesi tarafından onaylandı. Bu yönergeler, laboratuvar hayvanlarının bakımı ve kullanımı için ABD Ulusal Sağlık Enstitüleri yönergelerine uygun olarak formüle edilmiştir. Torasik aort elde edildi ve daha önce yayınlandığı gibi düz kas hücrelerinin izolasyonu için kolajenaz bazlı enzimatik sindirime tabi tutuldu [16]. Hücreler ekildi ve %10 (h/h) FBS, penisilin, streptomisin, fibroblast büyüme faktörü ve epidermal büyüme faktörü ile takviye edilmiş DMEM-F12 ortamında kollajen kaplı 6 oyuklu doku kültürü kaplarına %5 CO2'lik nemli bir atmosferde kültürlendi. % 2 –95 hava daha önce bildirildiği gibi [16] . Deneysel tedavilerden önce, hücreler gece boyunca serumsuz bırakıldı. Tüm deneyler, ikinci pasaja kadar sakin hücrelerle yapıldı.

                2.4 İmmunoblotlama


                Hücreler buz soğukluğunda fosfat tamponlu salinle yıkandı, ardından Triton X liziz tamponunda (20 mmol/LTris, 100 mmol/L NaCl, %10 triton X-100, 1 mmolL/L EDTA, 1 mmol/L sodyum ortovanadat, 2,5 mmol/L sodyum pirofosfat, %0,5 sodyum deoksikolat, Sigma'dan 1X proteaz inhibitörü). Poliakrilamid jeller üzerinde ayırmanın ardından, proteinler elektroforetik olarak Amersham'dan polivinilidendiflorür (PVDF) zarlarına aktarıldı. Aktarılan proteinler, üreticinin talimatlarına göre ilgili birincil ve ikincil antikorlarla inkübe edildi ve lekelerin eşit şekilde yüklendiği, lekelerin p-aktin ile yeniden incelenmesiyle doğrulandı. Geliştirilmiş kemilüminesans bazlı ECL artı saptama kitleri, Cell Signaling Technology Inc. Beverly, MA, ABD'den temin edildi.

                2.5 DAF2-DA Görüntüleme Yoluyla Nitrik Oksit (NO) Ölçümleri


                Kültürlenen SMC'ler, PDGF-BB (20 ng/ml) ile tedaviden önce, belirli bir süre boyunca Gentiana lutea ekstraktı varlığında veya yokluğunda serum aç bırakıldı . Hücre içi NO ölçümü için hücreler, nitrik oksit sentaz substratı olarak 10 umol/L DAF2-DA ve 1 mmol/L L-arginin ile birlikte inkübe edildi. NO salınımı, hücresel NO'nun DAF2 boyasına bağlanması nedeniyle yeşil floresan görünümü olarak puanlandı. DAF2-DA, hücresel esterazların etkisi nedeniyle hücreye girdikten sonra diasetat parçasını kaybeden ve NO'ya bağlandıktan sonra floresan yayan hücre geçirgen bir boyadır [17] . Görüntüler, ProgResCapturePro 2.7 kamera ile donatılmış Olympus immünofloresans mikroskobu kullanılarak çekildi ve ardından ImageJ yazılımı (NIH) ile analiz edildi.

                2.6 Alamar Mavi Testi


                Hücre canlılığı, Alamar Blue testi [18] ile ölçülmüştür . Kısaca, Alamar mavisi (Sigma'dan Resazurin sodyum tuzu), hücre kültürü ortamında 1 mg/mL'lik bir stok ve 0.1 mg/mL'lik bir nihai çalışma konsantrasyonu yapmak üzere pH 7.4'lük fosfat tamponlu salin içinde eritildi. Resazurin, hücrenin indirgeyici ortamını pembe renkli bir resorufine indirgeyerek ölçen bir redoks göstergesidir. Gentiana ekstraktının (1 mg/ml) varlığında veya yokluğunda PDGF-BB (20 ng/ml, 24 saat) ile deneysel tedavilerin ardından hücreler, alamar mavisi boyası ile muamele edildi. Renk değişimi, Spectramax'tan çok modlu plaka okuyucu kullanılarak reaktifin sırasıyla oksitlenmiş ve indirgenmiş formlarını değerlendirmek için 590 nm ve 570 nm'de kolorimetrik olarak izlendi.

                2.7 Hücre Döngüsü Analizi


                RASMC'ler, kollajen kaplı 6 oyuklu tabaklara ekildi ve %70 birleşme noktasına ulaşana kadar büyüme ortamında tutuldu. Daha sonra senkronizasyon için gece boyunca serum aç bırakıldı ve ardından G lutea ile veya G lutea olmadan PDGF-BB (20 ng/ml) ile tedavi edildi.24 saate kadar ekstrakte edin. Hücreler, tripsinize edildi, 12000 rpm'de 10 dakika santrifüjlendi ve peletler, 0.3 ml PBS içinde yeniden süspanse edildi. Hücre fiksasyonu, 16 saat boyunca 4°C'de buz gibi soğuk %70 etanol ile yapıldı. Sabitlenen hücreler vortekslendi ve 12000 rpm'de 5 dakika süreyle kısa süre santrifüjlendi, ardından topak, boyama için 10 mg/ml RNAazA ve propidyum iyodür (50 ug/ml) içeren PBS içinde yeniden süspanse edildi. 37°C'de 1 saat inkübasyonun ardından, her bir hücrenin çekirdeğindeki PI-DNA kompleksi, FACS Diva (Becton and Dickinson Co., Franklin Lakes, NJ, ABD) kullanılarak ölçüldü. Hücre döngüsünün çeşitli aşamalarındaki hücrelerin yüzdesini belirlemek için müteakip analiz FlowJo yazılımı kullanılarak yapıldı.

                2.8 Yanaşma Analizi


                Gentiana lutea bileşenlerinin insan MEK1 üzerine yerleştirme analizi , AutoDock4 [19] 'un Lamarckian genetik algoritması kullanılarak gerçekleştirilmiştir . Varsayılan kenetlenme bölgeleri ilk önce arama alanı olarak tüm makromoleküller kullanılarak tanımlandı, ardından yüksek bağlanma enerjisine sahip bölgelerde sert kenetlenme yapıldı. Analiz için kullanılan MEK1'in PDB kimlikleri 3EQF ve 3EQH idi [20] . Bunlar MEK1'in Mg2 + ile üçlü komplekslerinin kristal yapılarıdır.ATP ve sırasıyla K252a ve U1026 inhibitörleri. Çalışma için kullanılan ligandların kimyasal kimlikleri şöyleydi: K252A için CID 9912413, U1026 için CID 3006531, gentipikrosid için CID 88708, amarogentin için CID 115149, izoviteksin için CID 162350, swertiamarin için CID 442435 ve gentisin için CID 5281636. Yerleştirme analizi için arama parametreleri aşağıdaki gibidir: Izgara parametreleri: nokta sayısı, 62 × 62 × 62, aralık: 0,375 Å (Katı yerleştirme), 1,0 Å (Kör yerleştirme), çalıştırma sayısı: 100, başlangıç ​​popülasyonu boyutu: 150 , maksimum değerlendirme sayısı: 2500000, maksimum nesil sayısı: 27000 ve diğer tüm parametreler için varsayılan değerler kullanılmıştır.

                2.9 İstatistiksel Analiz


                Sonuçlar, minimum dört bağımsız deney için ortalama±SEM olarak ifade edildi ve istatistikler, GraphPad Prism yazılımı kullanılarak Student t-testi kullanılarak yapıldı. P <0.05 değerleri istatistiksel olarak anlamlı kabul edildi.

                Git: Sonuçlar

                3.1 Ekstraktın Sitotoksik Konsantrasyonlarının Belirlenmesi


                Ekstrakt üzerinde daha önce yapılan UPLC ve MALDI-TOF analizleri [14] , şu bileşiklerin varlığını bildirdi: gentisin, bellidifolin-8-O-glucoside, demethylbellidifolin-8-O-glucoside, isovitexin, swertiamarin, amarogentin ve getiopicrosid. Bunlar arasında, ekstraktın ana bileşeni daha önce bildirildiği gibi gentiopikrosiddir [14] . İlk olarak , birincil kültürler RASMC'ler, sıçan ve insana özgü aortik düz kas hücre hatları A7r5 ve ATCC CRL-1999 için proliferasyonu %50 (ICso) oranında önleyeceği ekstrakt konsantrasyonunu ilk olarak belirledik . Bunlar, aşağıda gösterildiği gibi RASMC'lerin birincil kültürleri için 2,22 mg/ml, A7r5 için 2,7 mg/ml ve insan hücre dizisi için 3,43 mg/ml olarak bulunmuştur.Şekil 1.

                Şekil 1
                Düz kas hücreleri üzerinde G. lutea ekstresi (1 mg/ml) için IC50 değerleri .
                A) Sıçan aort düz kas hücrelerinin (RASMC'ler) birincil kültürleri, B) Sıçan aortik düz kas hücre dizisi A7r5 ve C) İnsan aortik düz kas hücre dizisi ATCC-CRL-1999. 3.2 Ekstraktın PDGF-BB ile Uyarılan Hücre Çoğalması Üzerindeki Etkisi


                Daha sonra düz kas hücrelerinin G lutea ekstresi (1 mg/ml) ile 24 saat süreyle birlikte inkübasyonunun PDGF-BB (20 ng/ml) kaynaklı proliferasyonu bloke edip etmediğini belirlemeye çalıştık . görüldüğü gibişekil 2ekstrakt, hem sıçan aortik düz kas hücrelerinin primer kültürlerinde, resazurinin (alamar blue reaktifi) indirgenmiş resorufine PDGF-BB ile indüklenen dönüşümünü önemli ölçüde bloke etti (incir. 2A) ve A7r5 hücre hattı (incir. 2B). Ancak bu etki, Annexin V etiketlemesi olarak puanlanan apoptozun indüklenmesinden kaynaklanmamıştır (incir. 2C), resazurin göstergesinin tek başına ekstraktla etkileşiminden de kaynaklanmamıştır (veriler gösterilmemiştir). Daha sonra ekstraktın hücre döngüsü ilerlemesi üzerindeki etkisini analiz ettik. G 0 /G 1 fazında hücrelerin %85±2 senkronizasyonunu sağlamak için gece boyunca serum açlığı yapıldı . Hücreler daha sonra 20 ng/ml PDGF-BB ile işlendi ve propidyum iyodür işaretlemesi kullanılarak S ve G2/M fazına giriş için tedaviden 12 ve 18 saat sonra analiz edildi (incir. 3 A). S fazındaki hücre yüzdesi, PDGF-BB'ye yanıt olarak kontrol hücrelerinde %5,5±2'den 12 ve 18 saatte sırasıyla %16,25±1,1 ve %24,25±1,1'e yükseldi (incir. 3B). G 2 /M fazındaki hücre sayısı ise kontrolde %9,25±0,75'ten 12 saatte %16,00±1,3'e ve 18 saatte %21,00±1,6'ya yükseldi. G lutea ekstraktı ile muamele, PDGF-BB'ye yanıt olarak senkronize hücrelerin S ve G2/M fazına girişini önemli ölçüde inhibe etti .şekil 3A ve B.

                şekil 2
                G. lutea ekstraktının (1 mg/ml) proliferasyon ve apoptoz üzerindeki etkisi .
                A) Ekstraktın sıçan aortik düz kas hücrelerinin (RASMC'ler) birincil kültürlerinin PDGF-BB (20 ng/ml, 24 saat) indüklenmiş proliferasyonu üzerindeki etkisi, B) A7r5 ve C) deneysel tedavilere yanıt olarak apoptotik RASMC'lerin yüzdesi. Kontrole karşı *P<0.05 ve ***P<0.001 ve PDGF tedavisine karşı †P<0.05 ve †††<0.001.


                Figür 3
                RASMC'lerin hücre döngüsü analizi.
                A) G. lutea ekstraktının varlığında ve yokluğunda PDGF-BB (20 ng/ml) ile muameleden sonra hücre döngüsünün çeşitli aşamalarında hücreleri gösteren temsili akış sitogramı ve B) Dört bağımsız deney için verileri özetleyen çubuk grafik. ***P<0.001, kontrole karşı, ††<0.01 ve †††<0.001, PDGF tedavisine karşı. 3.3 PDGF-BB, ERK1/2-nitrik Oksit Eksenini Etkinleştirir


                PDGF-BB tedavi süresi, ERK1'in Threonin 202 ve Tirozin 204 fosforilasyonundaki artış ve Threonin 185 ve Tirozin 187'de ERK2'nin ikili fosforilasyonu olarak ölçülen ERK1/2 aktivasyonunu bağımlı olarak arttırdı (incir. 4A). ERK1/2 aktivasyonu bir dakikadan itibaren görüldü ve 30 dakikaya kadar gözlendi. PDGF tedavisi aynı zamanda hücre içi nitrik oksit (NO) seviyelerini 30 saniye gibi kısa bir sürede artırdı (incir. 4B&C). Nitrik oksitteki erken artış, nitrik oksit sentazın (eNOS) endotelyal izoformunun Akt aracılı Ser 1177 fosforilasyonuyla aynı zamana denk geldi (incir. 4D). eNOS'taki bu kalıntı, NO sentaz aktivitesini aktive eder [21] . 30 dakikadan itibaren PDGF'ye yanıt olarak iNOS ifadesinde bir artış da görülmüştür (incir. 4Ç). Sırasıyla 328000 ve L-NAME yoluyla hem ERK1/2 hem de nitrik oksit sentazların inhibisyonu, PDGF-BB kaynaklı proliferasyonu bloke etti (incir. 5A&B). Daha sonra kök ekstraktının PDGF-BB ile indüklenen hücresel NO üzerindeki etkisini belirledik. G lutea kökü ekstresi, PDGF-BB tarafından indüklenen hücresel NO'yu tamamen bloke etti (incir. 5C).

                Şekil 4
                PDGF-BB'nin (20 ng/ml) ERK1/2 ve NO sinyali üzerindeki etkisi.
                A) PDGF'ye yanıt olarak ERK1/2 aktivasyonunun süresi, B&C) PDGF'ye yanıt olarak hücre içi nitrik oksit oluşum süresi, D) PDGF'ye yanıt olarak Ser 1177 kalıntısının fosforilasyonu yoluyla eNOS aktivasyonu ve E) PDGF kaynaklı iNOS'un ifadesi. Çubuk grafikler, minimum dört bağımsız deney için verileri özetler. *P<0.05, **P<0.01 ve ***P<0.001, kontrole karşı.


                Şekil 5
                ERK1/2-NO ekseninin PDGF ile indüklenen RASMC proliferasyonu üzerindeki rolü ve G lutea'nın PDGF ile indüklenen NO indeksi üzerindeki etkisi.
                A) ERK inhibitörü 328000'in (1 µmol/L) PDGF ile indüklenen hücre proliferasyonu üzerindeki etkisi, B) NOS inhibitörü L-NAME'in (10 µmol/L) PDGF ile indüklenen hücre proliferasyonu üzerindeki etkisi, C) G lutea ekstraktının PDGF ile indüklenen hücre proliferasyonu üzerindeki etkisi PDGF'ye yanıt olarak hücresel NO. * Kontrole karşı P<0,05 ve karşılık gelen PDGF tedavisine karşı †<0,05, ††<0,01 ve †††<0,001. 3.4 G lutea Ekstrakt Blokları PDGF-BB Uyarıcı Hücre Sinyali


                Daha sonra kök ekstraktından etkilenen hücre içi sinyali belirlemeye çalıştık. Sulu ekstrakt, Tyr 751'de PDGF'nin indüklediği PDGF reseptörü tirozin oto-fosforilasyonunu bloke edemedi (incir. 6A) etki tarzının reseptörün aşağı akışı olduğunu düşündürür. Ancak, PDGF-BB'nin neden olduğu ERK1/2 aktivasyonunu bloke etti (incir. 6B). Sonuç olarak, ERK1/2'nin aşağı akış hedefi olan IKKa'nın fosforilasyonu da ekstrakt tarafından bloke edildi (incir. 6C). IKK-NFκB ekseni, iNOS transkripsiyonunu aktive etmede doğrudan yer aldığından [22] , ekstraktın PDGF-BB ile indüklenen iNOS ekspresyonu üzerindeki etkisini belirledik. Gerçekten de özüt, PDGF'nin indüklediği iNOS ifadesini bloke etti (incir. 6D&E). Hücre döngüsü düzenleyicileri arasında G lutea ekstresi, PDGF-BB ile indüklenen PCNA ve siklin D1 ekspresyonunu azaltmıştır (incir. 6D&E).

                Şekil 6
                G lutea ekstraktının, RASMC'lerde PDGF ile indüklenen hücre sinyali üzerindeki etkisi.
                A) PDGFR-β fosforilasyonu, B) ERK1/2 aktivasyonu, C) IKKa ve D&E'nin fosforilasyonu) En az üç bağımsız deney için siklin D1, PCNA ve iNOS'un ifadesini gösteren temsili leke ve çubuk grafik. *<0.05, **P<0.01 ve ***P<0.001, kontrole karşı ve ††<0.01 ve †††<0.001, PDGF tedavisine karşı. 3.5 Çıkarma Bileşenleriyle Yerleştirme Analizi


                MEK1, ERK1 ve ERK2'nin aktivasyon döngülerindeki treonin ve tirozin kalıntılarını onları aktive etmek için fosforile eden bilinen ikili özgüllük kinaz olduğundan [23] , [24] , ekstrakt bileşenlerinden herhangi birinin MEK1 ile etkileşime girip girmediğini belirlemek için yola çıktık. yerleştirme analizi yoluyla. MEK2 ve ERK1 için kristal yapı eksikliğinden dolayı bu moleküller üzerinde analiz yapamadık. AutoDock4 programının Lamarckian algoritması kullanılarak, özüt bileşenlerinin kör ve katı kenetlenmesi, yöntemlerde açıklandığı gibi insan mitojenle aktive olan protein kinaz kinaz1'in (MEK1) x-ışını yapısıyla yapıldı. İnsan MEK1'in, sıçan MEK1 ile önemli ölçüde homoloji paylaştığı belirtilmelidir.Şekil 7Abilinen inhibitörler K252a ve U1026'nın yanı sıra MEK1 ile isovitexin komplekslerini gösterir. Test edilen bileşenler arasında en iyi bağlanma enerjileri, izoviteksin için tahmin edilmiştir.tablo 1. Isovitexin'in MEK1'de K252a (PDB kimliği için: 3EQF) ve U1026 (PDB kimliği: 3EQH) gibi benzer sitelere bağlandığı bulundu (incir. 7A). 3EQF'de isovitexin ile yakın temasta olduğu tespit edilen kalıntılar Lys 97 , Leu 115 , Leu 118 , Val 127 , Met 143 , Glu 144 , His 145 , Met 146 , Leu 197 Cys 207 , Asp 208 , Phe 209 , Gly'dir. 210 ve Val 211 . Bunlar arasında izoviteksin, Lys 97 , Met 146 , Asp 208 ve Val 211 ile hidrojen bağı eğilimi gösterir . 3EQH'de isovitexin ile yakın temas halinde olan kalıntılar Lys idi.97 , Leu 118 , Ile 141 , Asp 208 , Phe 209 , Val 211 , Leu 215 , Ile 216 , Met 219 ve Ala 220 . Bunlardan isovitexin, Val211 ile hidrojen bağı olasılığı sergiler . Daha sonra, saflaştırılmış isoviteksinin gerçekten de RASMC'lerin birincil kültürlerinde PDGF-BB ile indüklenen sinyalleşmeyi ve proliferasyonu bloke edip etmediğini deneysel olarak belirlemek için yola çıktık. görüldüğü gibişekil 7B, değişen konsantrasyonlarda izoviteksin, PDGF ile indüklenen ERK1/2 aktivasyonunu ve hücrelerin S-Fazına girişini başarıyla bloke etti. İzoviteksinin PDGF ile indüklenen proliferasyon üzerindeki etkisi de alamar blue testi ile doğrulandı (incir. 7C).

                Şekil 7
                İzoviteksinin PDGF ile indüklenen RASMC proliferasyonu üzerindeki etkisi.
                A) İzoviteksinin MEK1 üzerindeki bağlanma cebini ortaya çıkaran yerleştirme analizi, B) İzoviteksinin (0,5–10 µmol/L) PDGF ile indüklenen ERK1/2 aktivasyonu ve hücre döngüsü ilerlemesi üzerindeki etkisi ve C) İzoviteksinin alamar yoluyla ölçülen PDGF ile indüklenen hücre proliferasyonu üzerindeki etkisi mavi deney. Çubuk grafikler, en az üç bağımsız deney için verileri özetler. ** Kontrole karşı P<0.01 ve PDGF tedavisine karşı ††<0.01 ve †††<0.001. tablo 1

                G lutea bileşenleri ve bilinen MEK1 için tahmin edilen bağlanma enerjileri . inhibitörler.
                Ligand 3EQF için Kcal/mol cinsinden en iyi tahmin edilen bağlanma enerjisi 3EQH için Kcal/mol cinsinden en iyi tahmin edilen bağlanma enerjisi
                Amarogentin -6.39 -1.83
                Gentiopikrosid -4.18 -4.02
                gentisin -5.76 -5,89
                İzoviteksin - 8.16 - 7.38
                Swertiamarin -3.8 -2,94
                K252A - 10.41 -
                U1026 - 8.85 - 10.79
                Ayrı bir pencerede aç
                Git: Tartışma


                Epidemiyolojik çalışmalar, diyet polifenollerinin alımı ile kanser ve ateroskleroz gibi kronik proliferatif hastalıkların ilerlemesi arasında ters bir ilişki olduğunu göstermektedir [25] . PDGF'ye yanıt olarak VSMC'lerin çoğalması ve yer değiştirmesi, anjiyoplasti sonrası intimal kalınlaşmayı tetikler [2] . PDGF reseptörü antagonistlerinin kullanımı, hayvan modellerinde hem VSMC'lerin in vitro proliferasyonunu hem de aterosklerozu bloke eder [2] , [26] . Bu çalışmada, G lutea köklerinin sulu ekstraktının, ERK1/2-iNOS sinyaline müdahale ederek PDGF-BB ile indüklenen hücre döngüsü ilerlemesini etkili bir şekilde bloke ettiğini gösterdik (aşağıda özetlendiği gibi).incir. 8). Ekstraktın bu etkileri ne sitotoksisite ne de apoptoz nedeniyledir.

                Şekil 8
                PDGF kaynaklı RASMC proliferasyonunu önlemek için G lutea ekstraktı tarafından bloke edilen yolu gösteren özet şekil .
                Hücre döngüsünün farklı aşamalarında hücrelerin girişi ve ilerlemesi, sıkı bir şekilde düzenlenmiş bir süreçtir. Siklinler, sikline bağımlı kinazlar (CDK'ler), CDK inhibitörleri, p53 ve pRb [27] , [28] gibi düzenleyici proteinlerin ardışık aktivasyonunu ve ekspresyonunu içerir . CDK2 ve CDK4'ün siklin D1 ile kompleks halinde aktivasyonu, hücrelerin G0 /Gı'den S fazına ilerlemesine aracılık eder. Sırasıyla CDK2, pRb'nin fosforilasyonunda ve çoğalan hücre nükleer antijeninin (PCNA) birikmesinde yer alır [29] . pRb'nin fosforilasyonuna ayrıca ERK1/2 aracılık eder, burada aktifleştirilmiş ERK1/2 doğrudan pRb'yi Ser 780 ve Ser 795 kalıntılarında fosforile eder [30]. Bu olay, siklin D1 ekspresyonundan önce gelir ve DNA sentezini desteklemek için transkripsiyon faktörlerinin salınması için gereklidir. G lutea ekstraktı tarafından bloke edilen PDGF-BB tedavisi üzerine ERK1/2 fosforilasyonunda bir artış gözlemledik . Sonuç olarak, özüt aynı zamanda siklin D1 ve PCNA'nın PDGF-BB ile indüklenen ifadesini de bloke etti. Bununla birlikte, ekstrakt, PDGF-BB'nin indüklediği PDGF-reseptör tirozin fosforilasyonunu bloke edemedi, dolayısıyla ekstraktın ve bileşenlerinin etki sahasının reseptörün aşağısında olduğunu gösterir. ERK1/2 aktivasyonunun hücre döngüsü üzerindeki etkileri, ilgili hücrelerin tipine bağlı olarak değişir. Örneğin, fibroblastlarda ERK1/2 aktivasyonu, siklin D1 ekspresyonu yoluyla Gı'den S fazına girişe yol açarken , epitel hücrelerinde G için gereklidir.siklinB1 ve c-fos yoluyla 2'den M'ye faz girişi [ 31] . G lutea ekstraktının siklinB1 ve c-fos ekspresyonu üzerindeki etkisini aramamamıza rağmen, ekstraktın ERK1/2 aktivasyonunu etkili bir şekilde bloke ettiği göz önüne alındığında, yanıt olarak hücrelerin G2'den M fazına girişini bloke etmek için aynı mekanizmayı kullandığına inanıyoruz . PDGF-BB.

                Bu çalışmada ayrıca PDGF-BB'nin indüklediği hücre içi NO üretiminin G lutea özütü tarafından önemli ölçüde bloke edildiğini gözlemledik. Nitrik oksidin hücre döngüsü üzerindeki kesin etkisi, yerel konsantrasyonuna bağlıdır. Düşük konsantrasyonlarda hücre proliferasyonunu arttırırken, daha yüksek dozlarda sitostatik ve/veya apoptotik etkilere neden olur [32] , [33] . Bu çalışmada NOS inhibitörü L-NAME, PDGF-BB'nin neden olduğu hücre proliferasyonunu bloke ettiğinden, PDGF-BB'ye yanıt olarak hücre içi NO'nun düz kas hücresi proliferasyonunu desteklediğine inanıyoruz. NO'nun hücre proliferasyonunu teşvik ettiği moleküler mekanizmalar iyi anlaşılmasa da, son çalışmalar onun p53'ün DNA bağlanma aktivitesini önleyerek apoptozu inhibe etme yeteneğini vurgulamıştır [34] .ve kaspazların S-nitrosilasyonu yoluyla [35] , [36] .

                Hücrelerdeki başlıca NO kaynakları, iNOS (indüklenebilir izoform), nNOS (nöronal izoform) ve eNOS (endotelyal izoform) [37] , [38] gibi NO sentazlarının (NOS) çeşitli izoformlarıdır . Bunlardan eNOS ve nNOS yapısal olarak eksprese edilirken iNOS ekspresyonu, agonist aktivasyonu üzerine MAPK'ya bağımlı bir şekilde transkripsiyonel olarak indüklenir [37] . ERK1/2, iNOS [22] transkripsiyonunu etkinleştirmek için IKK-NFκB eksenini etkinleştirir . PDGF-BB'nin vasküler düz kas hücrelerinde ERK1/2 aktivasyonunu indüklediğini, iNOS ekspresyonunun artmasından sorumlu olduğunu gözlemledik. Şaşırtıcı bir şekilde, hiperlipidemik farelerden türetilen aterom örneklerinde ERK1/2'nin bol miktarda ekspresyonu ve aktivasyonu görülmektedir [39]. Benzer şekilde, diyabetik sıçanlardan elde edilen VSMC'lerde artan iNOS ekspresyonu ve aktivitesi bildirilmiştir [40] . iNOS'un ateroskleroz patolojisine dahil olması, eksikliğinin kemirgen modellerinde aterosklerotik plakları [41] ve neo-intimal kalınlaşmayı [42] azaltması gerçeğiyle de desteklenmektedir . Bu azalmalar, ya azalmış LDL oksidasyonundan [41] ya da iNOS eksikliği olan VSMC'lerin G 0 /G 1 tutuklanmasından kaynaklanmaktadır [43] . G lutea varlığında VSMC'lerin G 0 /G 1 tutuklandığını da gözlemledik .Ayıkla. Ek olarak özüt, PDGF-BB'nin indüklediği iNOS ifadesini bloke etti. Bu gözlemler göz önüne alındığında, Gentiana lutea kök ekstraktının aktif ilkelerinin, ERK1/2-iNOS aktivasyonunu bloke ederek neo-intimal kalınlaşmayı önleyeceği konusunda spekülasyon yapmak cazip gelebilir.

                MEK1/2, ERK1/2'yi aktive edebilen bilinen tek yukarı akış kinazdır [23] . Bu nedenle , insan MEK1'in mevcut kristal yapıları ile G lutea ekstraktının tanımlanmış bileşenlerinin kenetlenme analizini gerçekleştirdik . Analiz için bilinen rekabetçi inhibitör K252a (PDBID: 3EQF) ve allosterik inhibitör U1026 (PDBID: 3EQH) ile üçlü kompleksler olarak MEK1'in iki kristal yapısı kullanıldı [20] . Bireysel bileşenler arasında isovitexin'in MEK1'de K252a ve U1026 olarak aynı bağlama cebine kenetlendiği görülmüştür. MEK1'deki inhibitör bağlanma sahasının Mg2 + ATP bağlanma sahasına bitişik olduğu ve bu iki sahanın fiziksel olarak Lys 97 ve Met yan zincirleri ile ayrıldığı belirtilmelidir.143 , diğer komşu amino asitler Leu 118 , Ileu 141 ve Phe 209 , amino asit 53'ten 369'a uzanan çekirdek kinaz alanı içinde derin bir hidrofobik cep oluşturur [20] , [44] . K252a'nın bağlanması, Glu 144 ve Met 146 ile hidrojen bağına bağlı olarak konformasyonel bir değişikliğe neden olur ve böylece MEK1'in katalitik aktivitesini etkiler [20] . Öte yandan, MEK1'in allosterik inhibisyonunun tam moleküler mekanizması hala belirsiz olsa da, kristal yapı çalışmaları, allosterik inhibitörlerin aktif bölgeye bitişik bağlanmasının, MEK1'in bazal ve doğal olarak oluşan inaktif bir formunu indüklediğini ve stabilize ettiğini tahmin etmiştir.[44] . Bu allosterik inhibitörler tarafından indüklenen konformasyonel değişiklik , enzimin ATP bağlama bölgesinde Glu 114 ve Lys 97 arasında korunmuş bir iyon çifti oluşumunu bozar. Analiz edilen Glutea bileşenleri arasında izoviteksin'in K252a ve U1026 ile aynı bölgeye kenetlendiği bulundu ve Lys 97 , Met 146 , Asp 208 veya Val 211 katalitik kalıntıları ile bir hidrojen bağı eğilimi gösterdi . Ayrıca hücre kültürü deneyinde isovitexin, PDGF'nin neden olduğu RASMC'lerin proliferasyonunu başarıyla bloke etti.

                Bitki kaynaklı polifenoller ve karotenoidler, serum lipid seviyelerini modüle ederek ve oksidatif stresi ve lipid peroksidasyonunu azaltarak aterosklerozun başlamasını ve ilerlemesini geciktirir. Bunlardan bazıları, ellagik asit [45] , Naringenin [46] , luteolin [47] ve lutein [48] gibi VSMC proliferasyonunu da bloke eder . PDGF-BB'nin aynı kökenli reseptörüne bağlanması ve ardından oto-fosforilasyon, hücre içi reaktif oksijen türlerinin (ROS) oluşumunu tetikler [49] . ROS daha sonra, PDGF reseptör sinyalinin bilinen negatif düzenleyicileri olan protein tirozin fosfatazları (PTPaz) geri dönüşümlü olarak etkisiz hale getirir [50]. Alternatif olarak bu serbest radikaller, Src, Pyk2 ve Syk gibi ERK1/2 fosforile edici kinazları aktive ederek ERK1/2 yolunu aktive eder [51] . Bir ekstraktın polifenolik içeriği daha fazla antioksidan kapasite kazandırdığından ve Gentaian lutea köklerinin hem su hem de etanol ekstraktlarının bizim tarafımızdan daha önce bildirildiği gibi yüksek polifenol içeriğine sahip olduğu göz önüne alındığında [15] , ekstraktın radikal yakalama aktivitesi yoluyla doğrudan PDGF'yi modüle etmesi muhtemeldir. indüklenmiş ERK1/2 aktivasyonu. Ek olarak diğerleri, çok sayıda başka Gentiana türünden elde edilen polifenollerin antioksidanlar gibi davrandığını ve lipit peroksidasyonunu etkili bir şekilde bloke ettiğini göstermiştir [52] – [55] . Reseptör tirozin fosforilasyonu özüt tarafından değiştirilmediğinden (incir. 5A), ekstraktın antioksidan etkisinin reseptörün aşağısında, ancak ERK1/2 aktivasyonunun yukarısında olacağına inanıyoruz. Bu nedenle, su ekstraktında bulunan izoviteksin [56] ve gentisin gibi antioksidanlar , bu kinazları etkisiz hale getirerek ERK1/2 aktivasyonunu bloke edebilir. Ancak bunun gelecekteki çalışmalarımızda test edilmesi gerekiyor.

                Diyabet, ateroskleroz riskini artırır. Bu hastalarda gözlenen hiperglisemi, poliol yoluyla glikoz metabolizmasını destekler ve ileri glikasyon son ürünlerinin (AGE'ler) oluşumunu indükler [57] . Proinflamatuar sitokinler ve büyüme faktörleri ile birlikte bu yollar, diyabetik mikro ve makro vasküler komplikasyonları teşvik eder. Aldoz redüktaz (AR), ployol yolağındaki hız sınırlayıcı enzim, aşırı ekspresyon üzerine, apoE-/- farelerde aterosklerotik lezyonları hızlandırır [58] . Ayrıca, inhibisyonu, vasküler düz kas hücrelerinin bFGF, anjiyotensin II, AGE'ler, hiperglisemi ve PDGF-AB kaynaklı proliferasyonunu başarıyla bloke eder [59] – [61]. AR inhibitörlerinin bu etkileri, ERK1/2-NFκB sinyalini zayıflatarak G1 fazında hücre döngüsünün durmasına yol açar [61] . İlginç bir şekilde, Gentiana lutea köklerinin metanol ve eter ekstraktlarının yakın zamanda ortak yazarlarımız tarafından AR'nin sıçan ve insan izoformlarını inhibe ettiği ve böylece yüksek glukoz koşulları altında sorbitol birikimini önlediği gösterildi [14] . Moleküler yerleştirme çalışmaları, amarogentini potansiyel bir AR inhibitörü olarak tanımlamıştır [14] . Mevcut çalışma, isoviteksini, Gentiana lutea köklerinin sulu ekstraktındaki bir başka anti-aterosklerotik ajan olarak tanımlamaktadır . Kanser hücre hatları üzerinde yapılan benzer çalışmalar, Gentiana triflora'nın kök ekstraktlarının anti-tümör aktivitesini göstermiştir. [62] , ancak bildiğimiz kadarıyla bu, Gentiana lutea ekstraktının vasküler düz kas hücreleri üzerindeki anti-proliferatif etkilerini gösteren ilk çalışmadır . Gentiana lutea'nın anti-diyabetik etkileri hakkında hiçbir şey bildirilmemesine rağmen , başka bir Gentianaceae üyesi olan Gentiana oliveri'den elde edilen izoorientin , streptozotosin ile indüklenen diyabetik sıçanlarda hipoglisemik ve anti-hiperlipidemik etkiler sergiler [63] . Bu nedenle gelecekte Gentiana lutea ekstraktlarının hipoglisemik etkilerinin bile çalışılması zorunlu hale gelmektedir . Nastasijević ve diğerleri tarafından yapılan son çalışma, Gentiana lutea'nın kök ekstraktlarında gentiopicrosid, isovitexin ve amarogentinin bulunduğunu göstermiştir.etkili miyeloperoksidaz inhibitörleridir [64] . Miyeloperoksidazın vasküler disfonksiyonun erken bir belirteci olduğu ve LDL'nin oksidatif modifikasyonunda ve dolayısıyla ateroskleroz patogenezinde çok önemli bir rol oynadığı unutulmamalıdır [65] . Bu gözlemler ve mevcut çalışmamız göz önüne alındığında, Gentiana ekstraktlarının ve bileşenlerinin, gelecekte etkili anti-ateroskleroz tedavisi ile ortaya çıkan ilaç ipuçları sağlayabileceğini öneriyoruz.

                Git: Çözüm


                Sonuç olarak, Gentiana lutea'nın sulu kök ekstresi ve onu oluşturan isovitexin, ERK1/2 aktivasyonunu ve bunun sonucunda iNOS ekspresyonunu bloke ederek sıçan aortik düz kas hücrelerinin PDGF-BB ile indüklenen proliferasyonunu etkili bir şekilde bloke eder.

                Git: teşekkürler


                Uma Rani Potunuru, Kıdemli Araştırma Bursu için Hindistan Hükümeti Bilimsel ve Endüstriyel Araştırma Konseyi'ni (CSIR) ve Madhulika Dixit, 'IYBA Bursu' için Hindistan Hükümeti Biyoteknoloji Departmanı'nı (DBT) kabul etti.

                Git: Finansman Tablosu


                Bu, Biyoteknoloji Departmanı (DBT) tarafından finanse edildi, Hindistan Hükümeti sponsorluğunda Hint-AB ortak 'FUNCFOOD' projesi. Bunun için hibe numarası BT/IN/EU/17/SN/2009 ve web sitesi adresi http://www.gmt.su.se/english/funcfood/main'dir . Finansörlerin çalışma tasarımında, veri toplama ve analizinde, yayınlama kararında veya taslağın hazırlanmasında hiçbir rolü yoktu.

                Git: Referanslar

                1. Waltenberger J (1997) Büyüme faktörü etkisinin modülasyonu: kardiyovasküler hastalıkların tedavisi için çıkarımlar . Dolaşım 96 : 4083–4094. [ PubMed ] [ Google Akademik ]
                2. Andrae J, Gallini R, Betsholtz C (2008) Fizyoloji ve tıpta trombosit kaynaklı büyüme faktörlerinin rolü . Genes Dev 22 : 1276–1312 22/10/1276 [pii];10.1101/gad.1653708 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                3. Claesson-Welsh L (1994) Trombosit kaynaklı büyüme faktörü reseptör sinyalleri . J Biol Chem 269 : 32023–32026. [ PubMed ] [ Google Akademik ]
                4. Scalbert A, Manach C, Morand C, Remesy C, Jimenez L (2005) Diyet polifenolleri ve hastalıkların önlenmesi . Crit Rev Food Sci Nutr 45 : 287–306 10.1080/1040869059096 [doi]. [ PubMed ] [ Google Akademik ]
                5. Brahmachari G, Mondal S, Gangopadhyay A, Gorai D, Mukhopadhyay B, et al. (2004) Swertia (Gentianaceae): kimyasal ve farmakolojik yönler . Chem Biodivers 1 : 1627–1651 10.1002/cbdv.200490123 [doi]. [ PubMed ] [ Google Akademik ]
                6. Nadinica EGSRABCDSAUC (1999) Gentianella achalensis'in topikal anti-inflamatuar aktivitesi . 70 : 166–171. [ Google Akademik ]
                7. Jankovic T, Savikin K, Menkovic N, Aljancic I, Leskovac A, et al. (2008) İnsan lenfositlerinde Gentianella austriaca fraksiyonlarının ve polifenolik bileşenlerin radyoprotektif etkileri . Planta Med 74 : 736–740 10.1055/s-2008-1074524 [doi]. [ PubMed ] [ Google Akademik ]
                8. Leskovac A, Joksic G, Jankovic T, Savikin K, Menkovic N (2007) Crataegus monogyna, Cornus mas ve Gentianella austriaca'nın fitokimyasal olarak karakterize edilmiş ekstraktlarının insan lenfositleri üzerinde in vitro radyoprotektif özellikleri . Planta Med 73 : 1169–1175 10.1055/s-2007-981586 [doi]. [ PubMed ] [ Google Akademik ]
                9. Menkovic N, Juranic Z, Stanojkovic T, Raonic-Stevanovic T, Savikin K, et al. (2010) Gentiana lutea ekstresi ve mangiferinin radyoprotektif aktivitesi . Phytother Res 24 : 1693–1696 10.1002/ptr.3225 [doi]. [ PubMed ] [ Google Akademik ]
                10. Aberham A, Schwaiger S, Stuppner H, Ganzera M (2007) Gentiana lutea L. köklerinde RP-HPLC ve LC-MS ile iridoidlerin, secoiridoidlerin, ksantonların ve ksanton glikozitlerin kantitatif analizi . J Pharm Biomed Anal 45 : 437–442 S0731–7085(07)00391-3 [pii];10.1016/j.jpba.2007.07.001 [doi]. [ PubMed ] [ Google Akademik ]
                11. Toriumi Y, Kakuda R, Kikuchi M, Yaoita Y, Kikuchi M (2003) Gentiana lutea'dan yeni triterpenoidler . Chem Pharm Bull (Tokyo) 51 : 89–91. [ PubMed ] [ Google Akademik ]
                12. Schmieder A, Schwaiger S, Csordas A, Backovic A, Messner B, et al. (2007) İzogentisin – sigaranın neden olduğu endotel hasarının önlenmesi için yeni bir bileşik . Ateroskleroz 194 : 317–325 S0021–9150(06)00650-2 [pii];10.1016/j.ateroskleroz.2006.10.019 [doi]. [ PubMed ] [ Google Akademik ]
                13. Rojas A, Bah M, Rojas JI, Gutierrez DM (2000) Gentiana spathacea'dan izole edilen gentiopicrosidin düz kas gevşetici aktivitesi . Planta Med 66 : 765–767 10.1055/s-2000-9774 [doi]. [ PubMed ] [ Google Akademik ]
                14. Akileshwari C, Muthenna P, Nastasijevic B, Joksic G, Petrash JM, et al. (2012) Aldoz redüktazın Gentiana lutea ekstreleri tarafından inhibisyonu . Exp Diabetes Res 2012 : 147965 10.1155/2012/147965 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                15. Nastasijevic B, Lazarevic-Pasti T, Dimitrijevic-Brankovic S, Pasti I, Vujacic A, et al. (2012) Gentiana lutea ekstraktlarının miyeloperoksidaz ve antioksidatif aktivitesinin inhibisyonu . J Pharm Biomed Anal 66 : 191–196 S0731–7085(12)00191–4 [pii];10.1016/j.jpba.2012.03.052 [doi]. [ PubMed ] [ Google Akademik ]
                16. Brown C, Pan X, Hassid A (1999) Nitrik oksit ve C-tipi atriyal natriüretik peptid, cGMP'ye bağlı bir mekanizma yoluyla birincil aortik düz kas hücresi göçünü uyarır: mikrofilament ayrışması ve değiştirilmiş hücre morfolojisi ile ilişki . Circ Res 84 : 655–667. [ PubMed ] [ Google Akademik ]
                17. Nickel T, Deutschmann A, Hanssen H, Summo C, Wilbert-Lampen U (2009) Akut ve kronik stres hormonları tarafından endotelyal biyolojinin değiştirilmesi . Microvasc Res 78 : 364–369 S0026–2862(09)00220–9 [pii];10.1016/j.mvr.2009.07.008 [doi]. [ PubMed ] [ Google Akademik ]
                18. Ahmed SA, Gogal RM Jr, Walsh JE (1994) Lenfositlerin proliferasyonunu izlemek ve belirlemek için yeni, hızlı ve basit bir radyoaktif olmayan tahlil: [3H]timidin dahil etme tahliline bir alternatif . J Immunol Methods 170 : 211–224. [ PubMed ] [ Google Akademik ]
                19. Morris GM, Huey R, Lindstrom W, Sanner MF, Belew RK, et al. (2009) AutoDock4 ve AutoDockTools4: Seçici reseptör esnekliği ile otomatik yerleştirme . J Comput Chem 30 : 2785–2791 10.1002/jcc.21256 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                20. Fischmann TO, Smith CK, Mayhood TW, Myers JE, Reichert P, et al. (2009) Nükleotitler ve inhibitörler ile MEK1 ikili ve üçlü komplekslerin kristal yapıları . Biochemistry 48 : 2661–2674 10.1021/bi801898e [doi];10.1021/bi801898e [pii]. [ PubMed ] [ Google Akademik ]
                21. Dimmeler S, Fleming I, Fisslthaler B, Hermann C, Busse R, et al. (1999) Akt'a bağlı fosforilasyon ile endotel hücrelerinde nitrik oksit sentazın aktivasyonu . Nature 399 : 601–605 10.1038/21224 [doi]. [ PubMed ] [ Google Akademik ]
                22. Jiang B, Brecher P, Cohen RA (2001) Nükleer faktör-kappaB'nin interlökin-1beta tarafından kalıcı aktivasyonu ve müteakip indüklenebilir NO sentaz ekspresyonu, hücre dışı sinyalle düzenlenen kinaz gerektirir . Arteriyoskler Trombüsü Vasc Biol 21 : 1915–1920. [ PubMed ] [ Google Akademik ]
                23. Shaul YD, Gibor G, Plotnikov A, Seger R (2009) ERK1c'nin MEK1b tarafından spesifik fosforilasyonu ve aktivasyonu: ERK kademesinde benzersiz bir yol . Genes Dev 23 : 1779–1790 23/15/1779 [pii];10.1101/gad.523909 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                24. Wortzel I, Seger R (2011) ERK Çağlayanı: Çeşitli Hücre Altı Organellerde Farklı İşlevler . Genler Kanser 2 : 195–209 10.1177/1947601911407328 [doi];10.1177_1947601911407328 [pii]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                25. Arts IC, Hollman PC (2005) Epidemiyolojik çalışmalarda polifenoller ve hastalık riski. Am J Clin Nutr 81: 317S–325S. 81/1/317S [pii]. [ PubMed ]
                26. Myllarniemi M, Frosen J, Calderon Ramirez LG, Buchdunger E, Lemstrom K, et al. (1999) İn vitro trombosit türevli büyüme faktörü reseptörü için seçici tirozin kinaz inhibitörü, in vivo olarak arteriyel intimanın yeniden yaralanmasından sonra düz kas hücresi proliferasyonunu inhibe eder . Kardiyovasküler İlaçlar Ther 13 : 159–168. [ PubMed ] [ Google Akademik ]
                27. Sanchez I, Dynlacht BD (2005) Siklinler, CDK'ler ve hücre döngüsü kontrolüne ilişkin yeni görüşler . Semin Cell Dev Biol 16 : 311–321 S1084–9521(05)00031–5 [pii];10.1016/j.semcdb.2005.02.007 [doi]. [ PubMed ] [ Google Akademik ]
                28. Golias CH, Charalapoulos A, Charalapoulos K (2004) Hücre proliferasyonu ve hücre döngüsü kontrolü: mini bir inceleme . Int J Clin Uygulaması 58 : 1134–1141. [ PubMed ] [ Google Akademik ]
                29. Akiyama T, Ohuchi T, Sumida S, Matsumoto K, Toyoshima K (1992) Retinoblastoma proteininin cdk2 ile fosforilasyonu . Proc Natl Acad Sci ABD 89 : 7900–7904. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                30. Guo J, Sheng G, Warner BW (2005) Ser780 ve Ser795'te epidermal büyüme faktörünün neden olduğu hızlı retinoblastoma fosforilasyonuna, ince bağırsak epitel hücrelerinde ERK1/2 aracılık eder . J Biol Chem 280 : 35992–35998 M504583200 [pii];10.1074/jbc.M504583200 [doi]. [ PubMed ] [ Google Akademik ]
                31. Dumesic PA, Scholl FA, Barragan DI, Khavari PA (2009) Epidermal G2/M ilerlemesi için Erk1/2 MAP kinazları gereklidir . J Cell Biol 185 : 409–422 jcb.200804038 [pii];10.1083/jcb.200804038 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                32. Choi BM, Pae HO, Jang SI, Kim YM, Chung HT (2002) Bir pro-apoptotik ve aynı zamanda anti-apoptotik modülatör olarak nitrik oksit . J Biochem Mol Biol 35 : 116–126. [ PubMed ] [ Google Akademik ]
                33. Villalobo A (2006) Nitrik oksit ve hücre çoğalması . FEBS J 273 : 2329–2344 EJB5250 [pii];10.1111/j.1742–4658.2006.05250.x [doi]. [ PubMed ] [ Google Akademik ]
                34. Calmels S, Hainaut P, ​​Ohshima H (1997) Nitrik oksit, vahşi tip p53 tümör baskılayıcı proteinin konformasyonel ve fonksiyonel modifikasyonlarını indükler . Kanser Res 57 : 3365–3369. [ PubMed ] [ Google Akademik ]
                35. Jiang ZL, Fletcher NM, Diamond MP, Abu-Soud HM, Saed GM (2009) Kaspaz-3'ün S-nitrosilasyonu, adezyon fibroblastlarının daha düşük apoptoz gösterdiği mekanizmadır . Yara Onarımı Yenilenmesi 17 : 224–229 WRR459 [pii];10.1111/j.1524–475X.2009.00459.x [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                36. Maejima Y, Adachi S, Morikawa K, Ito H, Isobe M (2005) Nitrik oksit, S-nitrosilasyon yoluyla kaspaz-3 aktivitesini önleyerek miyokardiyal apoptozu inhibe eder . J Mol Cell Cardiol 38 : 163–174 S0022-2828(04)00315-3 [pii];10.1016/j.yjmcc.2004.10.012 [doi]. [ PubMed ] [ Google Akademik ]
                37. Geller DA, Billiar TR (1998) Nitrik oksit sentazlarının moleküler biyolojisi . Kanser Metastazı Rev 17 : 7–23. [ PubMed ] [ Google Akademik ]
                38. Papapetropoulos A, Rudic RD, Sessa WC (1999) Kardiyovasküler sistemdeki nitrik oksit sentezlerinin moleküler kontrolü. Kardiyovasküler Res 43: 509–520. S0008–6363(99)00161–3 [pii]. [ PubMed ]
                39. Hu Y, Dietrich H, Metzler B, Wick G, Xu Q (2000) Kolesterolle beslenen tavşanların aterosklerotik lezyonlarında hücre dışı sinyalle düzenlenen kinazların (ERK1/2) aşırı ekspresyonu ve aktivasyonu . Arteriyoskler Trombüsü Vasc Biol 20 : 18–26. [ PubMed ] [ Google Akademik ]
                40. Di PN, Di TP, Di SS, Giardinelli A, Pipino C, et al. (2013) Diyabetik sıçanlardan alınan vasküler düz kas hücrelerinde artan iNOS aktivitesi: Ca(2+)/kalmodulin bağımlı protein kinaz II delta 2'nin (CaMKIIdelta(2)) potansiyel rolü . Ateroskleroz 226 : 88–94 S0021–9150(12)00748–4 [pii];10.1016/j.ateroskleroz.2012.10.062 [doi]. [ PubMed ] [ Google Akademik ]
                41. Miyoshi T, Li Y, Shih DM, Wang X, Laubach VE, et al. (2006) İndüklenebilir NO sentaz eksikliği, apolipoprotein E-eksikliği olan farelerde ilerlemiş fakat erken aterosklerozu azaltmaz . Life Sci 79 : 525–531 S0024–3205(06)00098–1 [pii];10.1016/j.lfs.2006.01.043 [doi]. [ PubMed ] [ Google Akademik ]
                42. Chyu KY, Dimayuga P, Zhu J, Nilsson J, Kaul S, et al. (1999) İndüklenebilir nitrik oksit sentaz nakavt farelerde arteriyel duvar yaralanmasından sonra azalmış neointimal kalınlaşma . Circ Res 85 : 1192–1198. [ PubMed ] [ Google Akademik ]
                43. Chyu KY, Dimayuga PC, Zhao X, Nilsson J, Shah PK, et al. (2004) iNOS eksikliği olan vasküler düz kas hücrelerinde değiştirilmiş AP-1/Ref-1 redoks yolu ve azalmış proliferatif yanıt . Vasc Med 9 : 177–183. [ PubMed ] [ Google Akademik ]
                44. Ohren JF, Chen H, Pavlovsky A, Whitehead C, Zhang E, et al. (2004) İnsan MAP kinaz kinaz 1 (MEK1) ve MEK2'nin yapıları, yeni rekabetçi olmayan kinaz inhibisyonunu tanımlar . Nat Struct Mol Biol 11 : 1192–1197 nsmb859 [pii];10.1038/nsmb859 [doi]. [ PubMed ] [ Google Akademik ]
                45. Chang WC, Yu YM, Chiang SY, Tseng CY (2008) Ellagik asit oksitlenmiş düşük yoğunluklu lipoprotein kaynaklı aortik düz kas hücresi çoğalmasını baskılar: hücre dışı sinyalle düzenlenen kinaz 1/2 ve çoğalan hücre nükleer antijeninin aktivasyonu üzerine çalışmalar ifade _ Br J Nutr 99 : 709–714 S0007114507831734 [pii];10.1017/S0007114507831734 [doi]. [ PubMed ] [ Google Akademik ]
                46.​​Chen S, Ding Y, Tao W, Zhang W, Liang T ve diğerleri. (2012) Naringenin, HO-1 indüksiyonu yoluyla TNF-alfa kaynaklı VSMC proliferasyonunu ve göçünü inhibe eder . Food Chem Toxicol 50 : 3025–3031 S0278–6915(12)00420–6 [pii];10.1016/j.fct.2012.06.006 [doi]. [ PubMed ] [ Google Akademik ]
                47. Lang Y, Chen D, Li D, Zhu M, Xu T ve diğerleri. (2012) Luteolin, Src ve Akt sinyal yollarını baskılayarak hidrojen peroksit kaynaklı vasküler düz kas hücrelerinin çoğalmasını ve göçünü inhibe etti . J Pharm Pharmacol 64 : 597–603 10.1111/j.2042–7158.2011.01438.x [doi]. [ PubMed ] [ Google Akademik ]
                48. Lo HM, Tsai YJ, Du WY, Tsou CJ, Wu WB (2012) Doğal olarak oluşan bir karotenoid olan lutein, kültürlenmiş vasküler düz kas hücrelerinde PDGF ve H(2)O(2) sinyalini azaltır ve migrasyonu tehlikeye atar . J Biomed Sci 19 : 18 1423–0127–19–18 [pii];10.1186/1423–0127–19–18 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                49. Kreuzer J, Viedt C, Brandes RP, Seeger F, Rosenkranz AS, et al. (2003) Trombosit kaynaklı büyüme faktörü, Gi1,2 aracılığıyla düz kas hücrelerinde NAD(P)H oksidaz tarafından reaktif oksijen türlerinin üretimini aktive eder . FASEB J 17 : 38–40 10.1096/fj.01–1036fje [doi];01–1036fje [pii]. [ PubMed ] [ Google Akademik ]
                50. Kappert K, Sparwel J, Sandin A, Seiler A, Siebolts U, et al. (2006) Antioksidanlar, fosfataz inhibisyonunu hafifletir ve kültürlenmiş VSMC'lerde ve restenozda PDGF sinyalini azaltır . Arterioskler Tromb Vasc Biol 26 : 2644–2651 01.ATV.0000246777.30819.85 [pii];10.1161/01.ATV.0000246777.30819.85 [doi]. [ PubMed ] [ Google Akademik ]
                51. Roskoski R Jr (2012) ERK1/2 MAP kinazları: yapı, işlev ve düzenleme . Pharmacol Res 66 : 105–143 S1043–6618(12)00097–7 [pii];10.1016/j.phrs.2012.04.005 [doi]. [ PubMed ] [ Google Akademik ]
                52. Yang JL, Liu LL, Shi YP (2010) Gentiana türlerinin fitokimyasalları ve biyolojik aktiviteleri . Nat Ürün Komün 5 : 649–664. [ PubMed ] [ Google Akademik ]
                53. Wu QX, Li Y, Shi YP (2006) Gentiana piasezkii'den antioksidan fenolik glikozitler . J Asian Nat Prod Res 8 : 391–396 W301786611Q72362 [pii];10.1080/10286020500172368 [doi]. [ PubMed ] [ Google Akademik ]
                54. Myagmar BE, Aniya Y (2000) Moğolistan'dan şifalı bitkilerin serbest radikal süpürücü etkisi . Fitotıp 7 : 221–229. [ PubMed ] [ Google Akademik ]
                55. Hudecova A, Kusznierewicz B, Hasplova K, Huk A, Magdolenova Z, et al.. (2012) Gentiana asclepiadea, antioksidan aktivite uygular ve hidrojen peroksit ve gümüş nanoparçacıkların neden olduğu DNA hasarının DNA onarımını geliştirir. Gıda Kimyasal Toksikol. S0278–6915(12)00431–0 [pii];10.1016/j.fct.2012.06.017 [doi]. [ PubMed ]
                56. Cao D, Li H, Yi J, Zhang J, Che H ve ark. (2011) Isı stresini hafifletmek için maş fasulyesi flavonoidlerinin antioksidan özellikleri . PLoS One 6 : e21071 10.1371/journal.pone.0021071 [doi];PONE-D-11-03702 [pii]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                57. Baba SP, Barski OA, Ahmed Y, O'Toole TE, Conklin DJ, et al. (2009) AGE öncülerinin indirgeyici metabolizması: kardiyovasküler dokuda AGE birikimini önlemek için metabolik bir yol . Diyabet 58 : 2486–2497 db09–0375 [pii];10.2337/db09–0375 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                58. Srivastava S, Vladykovskaya E, Barski OA, Spite M, Kaiserova K, et al. (2009) Aldoz redüktaz, apolipoprotein E-boş farelerde erken aterosklerotik lezyon oluşumuna karşı koruma sağlar . Circ Res 105 : 793–802 CIRCRESAHA.109.200568 [pii];10.1161/CIRCRESAHA.109.200568 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                59. Dan Q, Wong R, Chung SK, Chung SS, Lam KS (2004) Aortik düz kas hücresi göçü ve monosit adezyonu üzerinde poliol yolu ile enzimatik olmayan glikasyon arasındaki etkileşim . Life Sci 76 : 445–459 S0024–3205(04)00839–2 [pii];10.1016/j.lfs.2004.09.010 [doi]. [ PubMed ] [ Google Akademik ]
                60. Ramana KV, Chandra D, Srivastava S, Bhatnagar A, Aggarwal BB, et al. (2002) Aldoz redüktaz, vasküler düz kas hücrelerinde mitojenik sinyallemeye aracılık eder . J Biol Chem 277 : 32063–32070 10.1074/jbc.M202126200 [doi];M202126200 [pii]. [ PubMed ] [ Google Akademik ]
                61. Tammali R, Saxena A, Srivastava SK, Ramana KV (2010) Aldoz redüktaz, hücre döngüsünün G1/S faz geçişini modüle ederek vasküler düz kas hücre proliferasyonunu düzenler . Endokrinoloji 151 : 2140–2150 tr.2010–0160 [pii];10.1210/en.2010–0160 [doi]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                62. Matsukawa K, Ogata M, Hikage T, Minami H, Shimotai Y, et al.. (2006) Kültürlenmiş ve implante edilmiş tümör hücreleri üzerinde yılan otu bitkisinden (Gentiana triflora) kök ekstraktının antiproliferatif aktivitesi. Biosci Biotechnol Biochem 70: 1046–1048. JST.JSTAGE/bbb/70.1046 [pii]. [ PubMed ]
                63. Sezik E, Aslan M, Yeşilada E, Ito S (2005) Gentiana olivieri'nin hipoglisemik aktivitesi ve aktif bileşenin biyoassay-yönelimli fraksiyonlama teknikleri ile izolasyonu . Life Sci 76 : 1223–1238 S0024–3205(04)00949-X [pii];10.1016/j.lfs.2004.07.024 [doi]. [ PubMed ] [ Google Akademik ]
                64. Nastasijevic B, Lazarevic-Pasti T, Dimitrijevic-Brankovic S, Pasti I, Vujacic A, et al. (2012) Gentiana lutea ekstraktlarının miyeloperoksidaz ve antioksidatif aktivitesinin inhibisyonu . J Pharm Biomed Anal 66 : 191–196 S0731–7085(12)00191–4 [pii];10.1016/j.jpba.2012.03.052 [doi]. [ PubMed ] [ Google Akademik ]
                65. Schindhelm RK, van der Zwan LP, Teerlink T, Scheffer PG (2009) Miyeloperoksidaz: kardiyovasküler hastalık risk sınıflandırması için faydalı bir biyobelirteç mi? Clin Chem 55 : 1462–1470 clinchem.2009.126029 [pii];10.1373/clinchem.2009.126029 [doi]. [ PubMed ] [ Google Akademik ]
                Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                Yorum yap


                • #9
                  ÇENTİYAN İle Manken Hastalığı Ve Aşırı Zayıflama, İştahsızlık

                  Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                  Yorum yap


                  • #10
                    ÇENTİYAN İle İştahsızlık

                    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                    Yorum yap


                    • #11
                      ÇENTİYAN İle İştahsızlık

                      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                      Yorum yap


                      • #12
                        ÇENTİYAN İle Anoreksiya Nevosa, İştahsızlık Ve Su Orucu

                        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                        Yorum yap


                        • #13
                          ÇENTİYAN İle İştahsızlık

                          Yorum yap


                          • #14
                            Çentiyan Nedir Aneroksiya Nervoza Nedir Kilo Alma Yolları Aşırı Zayıflarsak Ne Olur Baygınlık.

                            Yorum yap


                            • #15
                              Aşırı Zayıflık Neden Olur Çentiyanın Faydaları Nedir Kilo Alma Yolları Sağlıklı Kilo Nasıl Alınır

                              Yorum yap

                              Hazırlanıyor...
                              X