Duyuru

Collapse
No announcement yet.

Biberiye Forte

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Biberiye Forte

    BİBERİYE

    Funda | 0,5-2m | 1-7 Aylar | Na,Ho,Ca,Ar | Yaprakları Sürgünleri

    Biberiye, Rosmarin, Rosmarinus officinalis
    Kuş dili
    Hasalban

    Familyası: Ballıbabagillerden, Lippenblütengewâchse, Lamiaceae

    Drugları: Biberiye yaprağı; Rosmarini folium
    “ eterik yağı; Rosmarini aetheroleum
    Biberiyenin genellikle yaprakları, nadiren sürgünleri de çay, tentür, natürel ilaç, baharat ve eterik yağ elde etmek için kullanılır.

    Giriş: Ballıbabagillerin alt grubu olan Rosmarinusgillere dahil olan Biberiye kendi grubu içinde sadece bir tür olarak mevcuttur. Latince ”ros” ve “marinus” kelimelerinden türemiş olup deniz kırağı anlamına gelir. Türkçe Biberiye diye anılması tadının acı olması nedeni iledir ve ayrıca Kuş dili diye de anılır. Bitkiye kuş dili denmesi yapraklarının kuş diline benzemesindendir. Vatanı Akdeniz ülkeleri olan bitki subtropik ve ılıman iklimli ülkelerde süs bitkisi olarak yetiştirilmektedir. Bitki çok eskilerden beri Akdeniz ülkelerinde baharat olarak kullanılmış ve Kneipp’la (1821-1897) birlikte kan dolaşımı rahatsızlıklarına karşı kullanmaya başlamış ve onu diğer araştırmacıların çalışmaları izlemiştir.

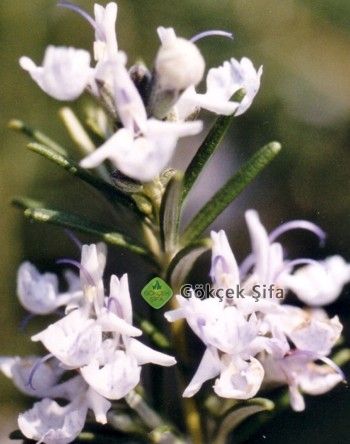
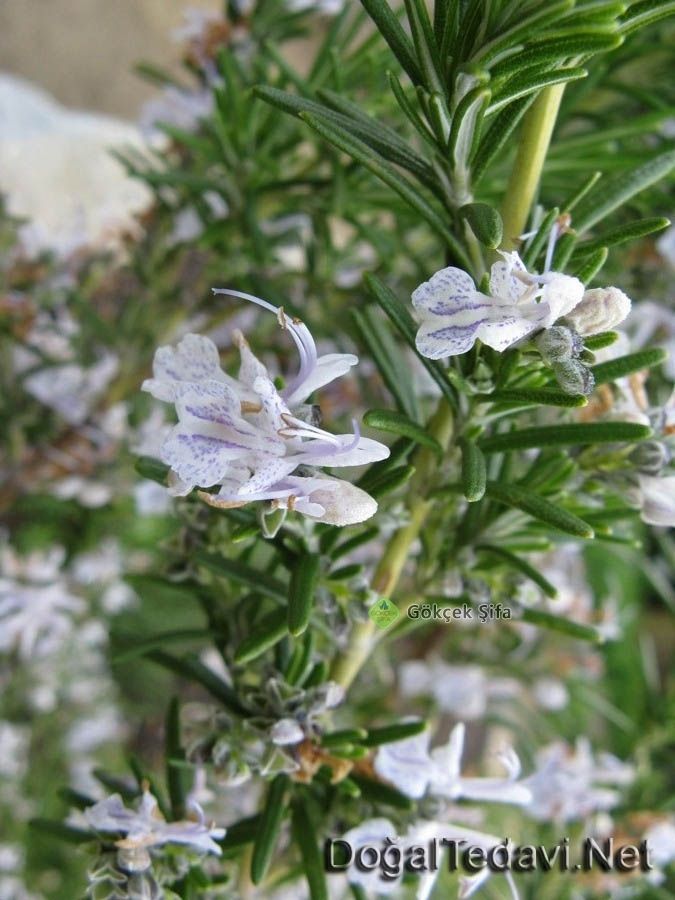
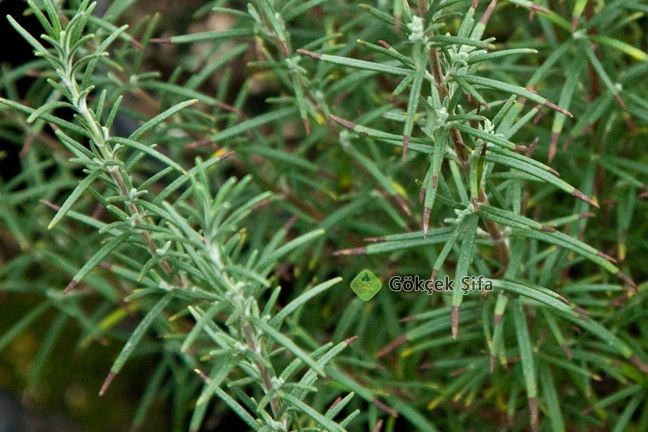
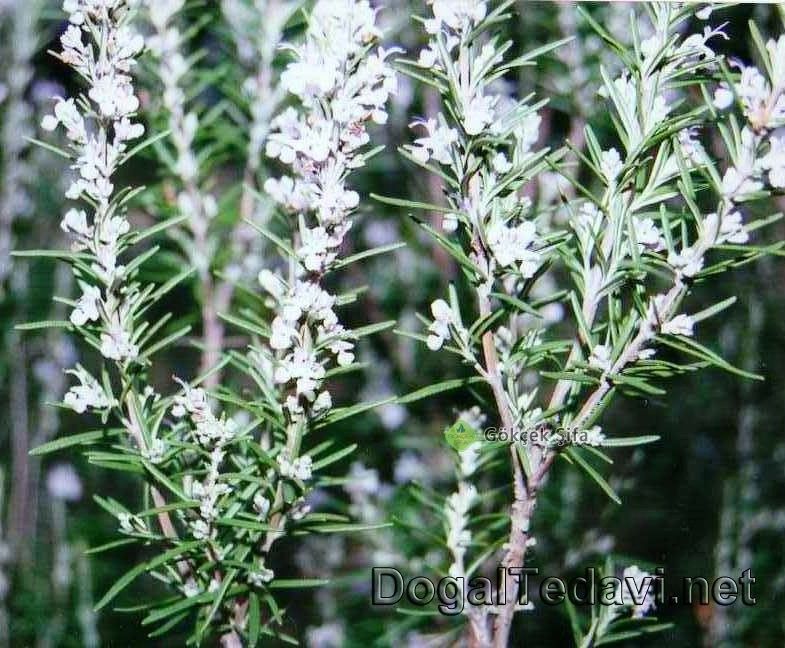
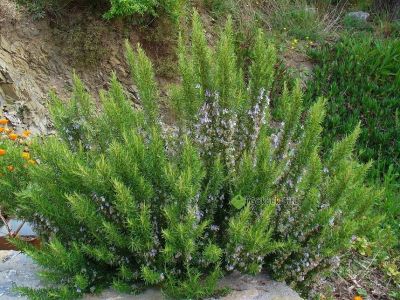
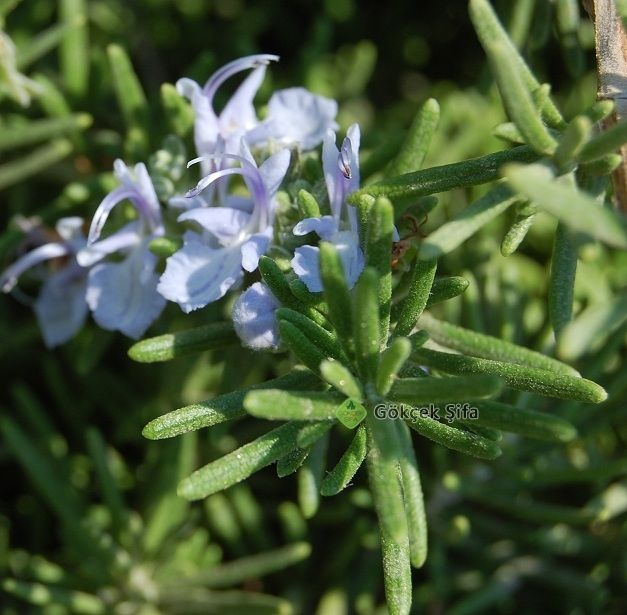
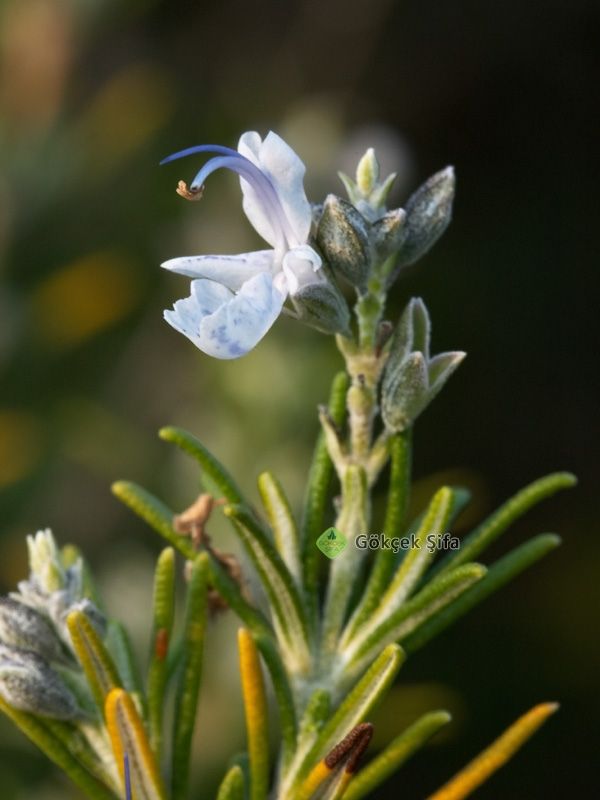
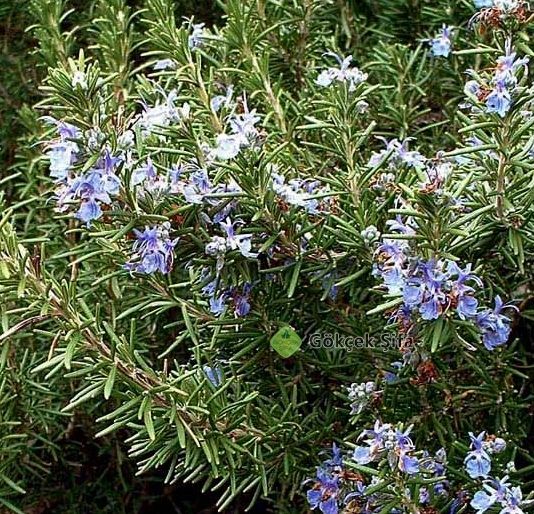
    Botanik: Her zaman yeşil olan bir bitkidir, yani yapraklarını dökmez. 0,5-2 m boyunda dikine yükselir ve oldukça sık çatallaşır ve kökleri ile bulunduğu yerde yayılarak kümeler oluşturur. Yaprakları adından da anlaşıldığı gibi kuş dili şeklinde olup 2-4cm uzunluğunda 0,2-0,4cm eninde, üst yüzeyi parlak yeşil, alt yüzeyi beyazımsı renkli, kenarları hafif geri dönük, oldukça sık yaprak bir aradadır. Geriden bakınca çam yaprağını andırır. Çiçekleri beyazımsı pembe, açık mavimsi, morumsu ve hatta vişne çürüğü renk tonlarında olabilir. Bunun sebebi bitkinin yetiştiği ülkeye ve toprağa göre birleşimindeki maddelerin değişmesinden ileri gelir. Biberiyenin en üst sürgünlerinde 5-10 adet çiçek bulunur ve bu çiçeklerin taç yaprakları iki çeneklidir. Alt çenek üç loplu olup orta lopu dil şeklinde ve yan loplar daha küçük ve üçgen şeklindedir. Üst çenekte iki lop bulunur ve tavşan kulağı gibi diktir ve ortadan iki döllenme tozluğu ise uzunca olup yay gibidir. Taç yaprakları kavrayan kupa yaprakları ise çan şeklinde olup uçlara doğru üç sivri toptan oluşur ve açık yeşil renklidir.

    Yetiştirilmesi: Akdeniz ülkelerinde yabani olarak yetişen Biberiye Almanya gibi soğuk sayılabilecek ülkelerde dahi yetişmektedir. Fakat kışın donmaması için üzerinin çam dalı ile örtmek gerekir. Biberiye tohumlarından bitkiyi yetiştirmek oldukça zordur. Bu nedenle ilkbaharda kesilen dallar nemli saksılara ekilir (çekiklemek) ve yetiştirilir.

    Hasat zamanı: Akdeniz ülkelerinde yıl boyunca yaprak ve çiçeklerini toplayıp kurutmak veya taze olarak işlemek mümkündür. Türkiye’nin Akdeniz, Ege ve Marmara bölgesinde problemsiz yetiştirmek mümkündür. Diğer bölgelerde ise kışın üzerini çam dalı veya benzeri şeylerle (çalı) örtmek gerekir. Şayet tentürü yapılacak ise taze olarak işlenir. Eterik yağını elde etmek için ise su buharı ile damıtılır.
    Malesef şifalı bitkiler toplama, kurutma, paketleme ve depolama işlemleri sırasında çok yanlışlar yapılmaktadır. Bitkinin şifalı kısmı yaprak veya çiçekleri ise asla Güneş altında kurutulmaz ve mutlaka gölgede kurutulmalıdır. Ayrıca örneğin bitki 5 günde kurudu ise, 2 gün daha kurumada bırakmak mahzurludur, çünkü birleşimindeki eterik yağları kaybettiğinden kalitesi düşer. Sadece bitki kökleri Güneş’te kurutulur ve kurur kurumaz hemen paketlenip depolanması gerekir. Şifalı bitkilerin Aktarlar’da açıkta satılması kalitesini kısa sürede düşürür ve etkisini oldukca azaltır.

    Birleşimi: Biberiye yaprağının birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Eterik yağı türevleri %1,5-2,5 oranında olup bunun %30-50’sini 1,8 Cineol (Sineol), %15-25 Campfer (Kafur), %15-25 α-Pinen, %4-6 Borneol, %1-5 Bornylasetat, p-Cymen, Limonen ve Myrcen içerir.
    b) Flavonlar; Cirsimaritin, Genkwanin, Diosmetin, Hispidulin ve Luteolin ile Flavonitlerden; Cirsimarin, Hesperetin ve Diosmin içerir.
    c) Diterpenoitler %0,35 oranında olup önemlileri; Carnosolasit, Carnosol, Rosmanol ve Epirosmanol içerir.
    d) Tarçın asit türevleri; en önemlisi Rosmarin asidi
    e) Triterpenler; Oleanolasit, Ursolasit, Hydroxyoleanolasit ve Betulinasit
    f) Ayrıca; Polisakkaritin hidrolizi sonucu; Arabinoz, Xyloz, Galaktoz, Mannoz içerir. 1,8 Cineol Okaliptusta, Campfer Kafurda ve α-Pinen Ardıçta incelenmiştir.

    Araştırmalar:
    1) Bir grup Japon ilim adamının yaptıkları araştırmalarda hücrelere zarar veren radikalleri (OH¯, O2¯ veya H2O2) Biberiye birleşimindeki Diterpenoidlerin zararsız hale getirdiğini tespit etmişlerdir. (Z.P.1.96.56) radikaller alyuvarları oksitleyerek eritirler ve böylece hemoglobin ortaya çıkar yani kanın yapısı bozulur ve hastalıklar ortaya çıkar.
    2) C.Hoefler, J.Fleurentin, F.Mortier, JM.Pelt ve J.Guillemann 1987’de kemeler üzerinde yaptıkları araştırmalarda biberiye yaprak ekstresinin safrayı artırdığını belgelemişlerdir. (HHB.VI.503)
    3) NB.Forster, H.Niklas, M.Renko ve V.Turu tarafından 1993’te kobaylar üzerinde bir araştırma yapılmış ve Biberiye ekstresinin krampları önlediği tespit edilmiştir. (HHB. VI.503)

    Tesir şekli: Kan dolaşımını kuvvetlendirici, vücudu dinlendirici, hazmettirici, antiseptik (mikropları öldürücü), antiflogistik (iltihapları önleyici), damarları büzücü ve kuvvetlendirici, terletici, kramp çözücü, adet (regl) halini kuvvetlendirici ve ayrıca cinsel gücü de artırdığı iddia edilmiştir.

    Kullanılması:
    a) Araştırmalar Biberiyenin serbest radikaller ve kramplara karşı etkilidir.
    b) Komisyon E’nin 223 nolu, 30/11/1985 tarihli ve 221 nolu ve de 28/11/1986 tarihli Monografi bildirisinde Biberiyen başta dahilen sindirim rahatsızlıklarından kokuşma ve haricen romatizma ve kan dolaşımı rahatsızlıklarına karşı kullanılabileceği beyan edilmiştir.
    c) Aroma tedavisi; su buharı destilasyonu ile elde edilen Biberiye eterik yağı başta; ruhsal yorgunluk, konsantrasyon zafiyeti, unutkanlık, kan dolaşımı zafiyeti, sinirsel kalp zafiyeti, migren, baş ağrısı ve baş dönmesi gibi rahatsızlıklara karşı etkili olduğu söylenmektedir.
    d) Halk arasında başta; sindirim zafiyeti, bağırsaklarda kokuşma, baş ağrısı, migren, adet rahatsızlıkları, unutkanlık, hafıza zafiyeti, sinirsel kalp rahatsızlığı ve kramplara karşı kullanılır. Haricense ağız içi, yutak, dişeti iltihaplanması, siyatik ezilme ve burkulmaya karşı kullanılır.

    Açıklama: Avrupalılar; Türkler kümmel yani baharatçı derdi. Türklerde Avrupalılara Frenk demişlerdir. Çünkü Avrupa’da Frengi hastalığı çok yaygındı ve Türklerde çok baharat kullanırlardı. Şimdi ise Avrupalılar bahçe, balkon ve tarlalarında Kekik ve Biberiye gibi birçok bitki yetiştir-mektedirler.

    Çayı: Bir veya iki kahve kaşığı ince kıyılmış Biberiye yaprağı demliğe konur, üzerine 300-400 ml kaynar su ilave edilerek 6-10 dk demlenmeye bırakılarak ve sonra süzülerek içilir. Bazı yazarlar kaynatılması gerektiğini söylemektedirler. Bu yanlış bir yoldur. Çünkü birleşimindeki eterik yağ uçarak yok olur.

    Çay Harmanları;

    Dr.Rauch’a göre kalp çayı (kalbi kuvvetlendirici, alçak tansiyona ve zafiyete karşı);
    >50 gr Alıç çiçeği
    >50 gr Biberiye yaprağı

    M.Pahlow’a göre kalp çayı (kan dolaşımı zafiyetine ve alçak tansiyona karşı çay);
    >20 gr Biberiye yaprağı
    >20 gr Oğul otu yaprağı
    >10 gr Kuşburnu
    >10 gr Hibiskus çiçeği

    E.Scheider’ya göre sinirsel nedenle kan dolaşımı yetersizliğine karşı çay;
    >30 gr Kedi otu kökü
    >30 gr Kılıç otu
    >20 gr Biberiye yaprağı
    >20 gr Oğul otu yaprağı

    W.Widmaier’ya göre kalp ve kan dolaşımı çayı;
    >20 gr Alıç yaprak ve çiçeği
    >20 gr Arnika çiçeği
    >20 gr Çuha çiçeği
    >20 gr Biberiye yaprağı
    >20 gr Oğul otu yaprağı

    Gökçek Kalp ve kan dolaşımı çayı;
    >20 gr Alıç yaprak ve çiçeği
    >20 gr Oğul otu yaprağı
    >10 gr Arnika çiçeği
    >10 gr Çuha çiçeği
    >10 gr Biberiye yaprağı

    Gökçek Sinir çayı;
    >40 gr kılıç otu
    >20 gr Oğul otu yaprağı
    >20 gr Çarkıfelek otu
    >10 gr Lavanta çiçeği
    >10 gr Biberiye yaprağı

    Gökçek Kan dolaşımı zafiyetine karşı çay;
    >30 gr Alıç yaprak ve çiçeği
    >20 gr Biberiye yaprağı
    >20 gr Civanperçemi çiçeği
    >20 gr Ökse otu yaprağı
    >20 gr Oğulotu
    >10 gr Arnika çiçeği

    Aroma terapi: Biberiye yaprakları su buharı ile damıtılır ve eterik yağı elde edilir. Bu eter yağından günde 3-5 defa 2-3 damla bir kesme şekere veya bir parça ekmeğe damlatılarak alınır. Biberiye eter yağında 10-15 damla aroma damlası aroma konisine damlatılır ve koku odaya güzel bir ava verir. Ev kadınları pencere, kapı ve yerleri silerken ilaçları sulara katılır ve eve güzel bir koku verir.

    Baharatı: Biberiyenin yaprak ve çiçekleri kurutulup toz haline getirildikten sonra yemeklere katılır. Genellikle pirzola, kızartma, kavurma veya sulu et yemekleri ile tavuk yemekleri ve çorbalara katılırsa özel bir tat verir.

    Merhemi: Merhemini yapmak için 100 gr Vazelin ve 100 gr Parafin ten-cerede hafif ısıtıldıktan sonra içine 100 gr Biberiye yağı katılır ve hafif ısıtıldıktan sonra soğumaya bırakılır. Bir gün bekledikten sonra hafif ısıtılarak süzülür ve tekrar soğumaya bırakılır.

    Banyosu: Biberiye banyosu için biberiye yaprak ve çiçeklerinden 20-30 gr haşlandıktan sonra 8-10 dk dem banyosuna katılır ve banyoda 15-20 dk kaldıktan sonra şampuan veya sabun kullanmadan 20-30 dk yatılır. Biberiye banyosu tansiyonu yükseltebilir.

    Homeopati’de: Biberiye yapraklarından 20 gr ince kıyılarak bir şişeye konur ve üzerine 80 ml %70’lik alkol ilave edilerek güneş ışınlarından uzakta 4-6 hafta muhafaza edildikten sonra süzülerek <> adı ile anılan tentür elde edilir. Bu tentürden günde 3-5 defa 10-15 damla alınır.

    Yan tesirleri: Biberiye yaprak ve çiçeğinin bilinen bir yan tesiri yoktur. Biberiye eter yağı ise oldukça serttir. Bu nedenle hamile kadınların kul-lanmaması gerekir.
    Su Damlası
    Slm ben Ankara dan Nesrin Sandal Sayın İbrahim Gökçek Hocamızdan DÜŞÜK TANSİYON için Göndermiş olduğu BİBERİYE SETİ kullandım çok büyük bir faydasını gördüm Kendimi hiç bu kadar iyi hissetmemiştim çok tşk ler. hocam.
    KAYNAK

    Salim Adar
    KALP BATMASI icin BİBERİYE SETİ ve ORMUS GOLD kullandim cok rahatim hocamdan Allah razi olsun 1 AY OLDU KULLANALI
    KAYNAK

    Ferhat Yaşar
    Selam hocam çok önceden Çin malı biberiye kapsülü almıştım fakat olumsuz haberleri duyunca bıraktım kullanmadım ve kendimce ne kullandıysam KİLO kontrol için faydasını görmedim ve çok üzülüyordum kilo veremeyeceğim diye şimdi 4 veya 5 gündür sizin BİBERİYE KAPSÜLÜ kullanıyorum TOK TUTUYOR, TANSİYONU DENGELİYOR. Hafiflemeye başladım ve tok tuttuğundan artık çok ekmek yeme ihtiyacım yok kuş gibi hafifliyorum RAHAT NEFES ALIYORUM çok şükür yine bitmeden ikinci BİBERİYE KAPSÜL, LAHANA MİX alacağım Allah razı olsun sizden herkese KİLO sorunu olana BİBERİYE KAPSÜLÜ hocamın ürünlerini İbrahim Gökçek ürünlerini tavsiye ediyorum.
    KAYNAK

    Hatice özay
    DÜŞÜK TANSİYONA iyi gelir demişti İbrahim hocam gerçekten de BİBERİYE SETİ iyi geldi. 3-4 aydır çok iyiyim. Şimdi tekrar sipariş veriyorum teşekkürler.
    KAYNAK

    alisveris.zamani_
    Merhaba, BİBERİYE SETİ kullanıyorum ve çok faydasını gördüğümü söyleyebilirim. BÜYÜK BİR ANTİOKSİDAN gerçekten kullandığımdan beri kendimi daha iyi hissediyorum artık kimyasal ilaç yok hayatımda hocamın ürünleri yetiyor çok teşekkürler.
    KAYNAK

    Cemal Unal
    DÜŞÜK TANSİYON için kullandığım BİBERİYE SETİ sayesinde kimyasal ilaçlardan kurtuldum. Düzenli olarak kullanıyorum çok memnunum kimyasal ilaçlar beni bitkin halsiz kılıyordu BİBERİYE SETİ sayesinde hayatım değişti.
    KAYNAK

    Kadir Bulut
    DÜŞÜK TANSİYON için BİBERİYE SETİ iyi geldi. 3-4 aydır çok iyiyim.Çok teşekkür ederim hocam
    KAYNAK
    Konu ahmetkirmizi tarafından (https://bitkiara.com/vb5/member/18434-ahmetkirmizi Saat 05 April 2023, 10:35 ) değiştirilmiştir.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Biberiye, Rosmarin, Rosmarinus officinalis


    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3


      Düşük Tansiyon Neden Olur Düşük Tansiyon Nasıl Geçer Düşük Tansiyon Nasıl Tedavi Edilir


      Düşük Tansiyon Nasıl Tedavi Edilir Tansiyon Düşüklüğüne Ne İyi Gelir


      BİBERİYE'nin Faydaları Ve Düşük Tansiyon


      BİBERİYE İle Düşük Tansiyon, Bayılma Ve Senkop


      BİBERİYE İle Kalp Damar Rahatsızlıkları, Düşük Tansiyon Ve Yüksek Tansiyon


      BİBERİYE İle Düşük Tansiyon, Serbest Radikaller Ve Anti Aging


      Biberiye ( Rosmarinus officinalis L.) uçucu yağının antioksidan aktivitesi ve hepatoprotektif potansiyeli

      Aleksandar Rašković , 1 Isidora Milanović , 2 Nebojša Pavlović , 1 Tatjana Ćebović , 3 Saša Vukmirović , 1 ve Momir Mikov 1
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler

      Ek Malzemeler
      Git: Soyut

      Arka fon

      Doğal antioksidan ürünler, patogenezlerinde oksidatif stresin rolü göz önüne alındığında, çeşitli patolojik karaciğer durumlarını tedavi etmek için giderek daha fazla kullanılmaktadır. Biberiye esansiyel yağı, antioksidan ve antimikrobiyal aktiviteleri nedeniyle gıda endüstrisinde zaten koruyucu olarak kullanılmaktadır, ancak ek sağlık yararları olduğu gösterilmiştir. Çalışmamızın amacı, biberiye esansiyel yağının sıçanlarda karbon tetraklorür kaynaklı karaciğer hasarı üzerindeki koruyucu etkisini değerlendirmek ve etki mekanizmasının hepatik oksidatif durumun modülasyonu ile ilişkili olup olmadığını araştırmaktır. yöntemler

      İzole biberiye esansiyel yağının kimyasal bileşimi gaz kromatografisi ve kütle spektrometrisi ile belirlendi. Antioksidan aktivite, DPPH testi kullanılarak in vitro olarak belirlendi. Serumdaki hepatosellüler hasarın enzim belirteçlerinin ve karaciğer homojenatlarındaki antioksidan enzimlerin aktiviteleri kinetik spektrofotometrik yöntemler kullanılarak ölçüldü. Sonuçlar

      Bu araştırmada, incelenen biberiye esansiyel yağının 29 kimyasal bileşiğini belirledik ve ana bileşenler 1,8-sineol (%43,77), kafur (%12,53) ve a-pinen (%11,51) idi. Araştırılan uçucu yağın, karbon tetraklorür kaynaklı akut karaciğer hasarı olan sıçanların serumunda AST ve ALT aktivitelerini 2 kata kadar azaltarak 5 mg/kg ve 10 mg/kg dozlarında hepatoprotektif etkiler gösterdiği bulunmuştur. Biberiye esansiyel yağı, karaciğer homojenatlarında karbon tetraklorür kaynaklı lipid peroksidasyonu artışını önledi. Ayrıca, 7 gün boyunca çalışılan uçucu yağ ile ön tedavi, özellikle 10 mg/kg dozunda, karaciğer homojenatlarında antioksidan enzim katalaz, peroksidaz, glutatyon peroksidaz ve glutatyon redüktaz aktivitelerini önemli ölçüde tersine çevirmiştir. Sonuçlar

      Sonuçlarımız, biberiye esansiyel yağının, DPPH testi ile belirlenen serbest radikal süpürücü aktivite sergilemesinin yanı sıra, fizyolojik savunma mekanizmalarının aktivasyonu yoluyla da hepatoprotektif etkilerine aracılık ettiğini göstermektedir.

      Anahtar Kelimeler: Rosmarinus officinalis , Biberiye, Uçucu yağ, Antioksidan enzimler, Hepatoproteksiyon, Oksidatif stres
      Git: Arka fon

      Karaciğer, ksenobiyotiklerin metabolizmasında, taşınmasında ve temizlenmesinde merkezi bir role sahiptir ve bu nedenle kimyasal kaynaklı toksisiteye karşı oldukça hassastır. Batı dünyasında ilaca bağlı karaciğer hasarı önemli bir sağlık sorunudur ve akut karaciğer yetmezliği vakalarının çoğundan sorumludur [ 1 ]. Kendine özgü olduğu kabul edilir ve genetik faktörlerin yanı sıra çevresel ve yaşam tarzı faktörleri ve önceden var olan patolojik koşullar da bireylerin kimyasal kaynaklı karaciğer hasarına duyarlılığını belirler. Kimyasal kaynaklı hepatotoksisitenin patofizyolojik mekanizmaları henüz tam olarak anlaşılmamıştır, ancak çoğunlukla ksenobiyotiklerin, oksidatif stresi indükleyen ve hücresel makromoleküllere zarar veren reaktif oksijen türlerine (ROS) metabolik dönüşümü ile ilişkilidir .]. Oksidatif stres, endojen ROS üretimi ile antioksidan sistemlerin aktivitesi arasındaki dengesizlik olarak, son zamanlarda sarılıksız subklinik hepatit, inflamatuar nekrotik hepatit, karaciğer gibi çok çeşitli karaciğer hastalıklarında gözlenen patofizyolojik değişikliklerde anahtar bir faktör olarak kabul edilmiştir. siroz ve hepatosellüler karsinom [ 3 , 4]. Bu karaciğer bozukluklarında oksidatif stresin rolünün daha iyi anlaşılması, karaciğer hastalıkları için terapötik bir yaklaşım olarak antioksidanların uygun kullanımına yol açabilir. Doğal antioksidan ürünler, özellikle fitokimyasallar, etkinlikleri ve güvenlikleri nedeniyle dünya çapında popülerlik kazanmıştır. Çeşitli patolojik karaciğer durumlarını tedavi etmek için giderek daha fazla kullanılmaktadırlar ve günümüzde karaciğer tedavisinde kullanılan ajanların yaklaşık yarısı ya doğal ürünler ya da bunların türevleridir [ 5 ].

      Biberiye ( Rosmarinus officinalis L., Lamiaceae) Akdeniz bölgesine özgü, odunsu çok yıllık bir bitkidir, ancak günümüzde süs ve aromatik bir bitki olarak tüm dünyada yetiştirilmektedir. Biberiye yaprakları yaygın olarak gıdaları çeşni olarak tatlandırmak için kullanılır, ancak bu bitki aynı zamanda farklı tıbbi amaçlar için de yaygın olarak kullanılmaktadır. Geleneksel tıpta, uyarıcı ve hafif bir ağrı kesici olarak kullanılan biberiye, baş ağrıları, dolaşım bozuklukları, iltihaplı hastalıklar, fiziksel ve zihinsel yorgunluğun tedavisinde en etkili bitkilerden biri olarak kabul edilmiştir. Biberiye ayrıca halk hekimliğinde kolleretik ve hepatoprotektif bir ajan olarak ampirik olarak kullanılmıştır [ 6 , 7 ]]. Biberiyenin farmakolojik etkilerinin çoğu, karnosol, karnosik asit, ursolik asit, rosmarinik asit ve kafeik asit gibi ana kimyasal bileşenlerinin yüksek antioksidan aktivitesinin sonucudur. Biberiyenin güçlü antioksidan özellikleri, esas olarak ana diterpenleri, karnosol ve karnosik asidin yanı sıra uçucu yağ bileşenlerine atfedilmiştir [ 8 ].

      Son zamanlarda, uçucu yağlar ve bunların aktif bileşikleri, farmakolojik özelliklerinden dolayı büyük ilgi görmektedir. Uçucu yağlar, çeşitli bitki organlarında sentezlenen ve çeşitli ekolojik işlevler uygulayan güçlü kokuya sahip uçucu bileşiklerin karmaşık karışımlarıdır [ 9 ]. Biyolojik aktivitelerinden dolayı uçucu yağların gıda muhafazasında, koku endüstrisinde ve aromaterapide faydalı olduğu bildirilmiştir [ 10 ]. Biberiye esans yağı (REO), bitkinin karakteristik kokusuna sahip, renksiz veya uçuk sarı bir sıvıdır ve çoğunlukla 1,8-sineole, kafur ve α-pinen gibi monoterpenlerden oluşur [ 6 ]. Antioksidan ve antimikrobiyal aktivitesi nedeniyle [ 11 , 12], REO, gıda ürünlerinin raf ömrünü uzatma ve depolama sırasında kalitelerini koruma yeteneğine sahiptir. Bu nedenle, gıda endüstrisinde biyokoruyucu olarak halihazırda kullanılmaktadır [ 13 ].

      Biberiyeden izole edilen esansiyel yağ, antioksidan bir ajan olarak işlev görmenin yanı sıra çeşitli sağlık yararları ve tedavi edici etkilere sahiptir. 2010'dan itibaren Avrupa İlaç Ajansı'nın (EMA) tavsiyesine göre REO, hazımsızlık ve gastrointestinal sistemin hafif spazmodik bozukluklarının tedavisinde ve ayrıca minör kas ve eklem ağrılarının giderilmesinde ve minör periferik dolaşım bozukluklarında bir adjuvan olarak kullanılabilir. [ 14 ]. Ayrıca, REO ile yapılan deneyler, anti-inflamatuar ve antinosiseptif [ 15 ], antidepresan [ 16 ], bilişi güçlendiren [ 17 ], DNA koruyucu [ 18 ] ve antikanser etkileri [ 19 ] gibi birkaç dikkate değer farmakolojik etkisini göstermiştir.], diğerleri arasında.

      Biberiyenin hepatoprotektif etkileri, karaciğer hasarının farklı deneysel modellerinde gözlemlenmiştir. Biberiye metanol özütü, karbon tetraklorür (CCl 4 ) ile indüklenen akut karaciğer hasarına karşı etkili olmuştur [ 20 ] ve biberiye suyu özütü, sıçanlarda azatioprin kaynaklı akut karaciğer hasarını önleyebilir [ 21 ]. Biberiye metanol özütü, CCl 4 tarafından indüklenen karaciğer sirozunun hem önleme hem de tersine çevirme deneysel modellerinde hepatotoksisiteyi önleyebilir [ 22 ]. Bildiğimiz kadarıyla, ana aktif bileşikleri olarak monoterpenler içeren biberiye esansiyel yağının potansiyel hepatoprotektif aktivitesi daha önce in vivo olarak test edilmemiştir.. Bu çalışmanın amacı, GC/MS ile Rosmarinus officinalis'in hava kısımlarından izole edilen uçucu yağın kimyasal bileşimini incelemek, elde edilen uçucu yağın sıçanlarda CCl 4'ün neden olduğu karaciğer hasarı üzerindeki koruyucu etkisini değerlendirmek ve araştırmaktı. etki mekanizmasının hepatik oksidatif durumun modülasyonu ile ilişkili olup olmadığı.

      Git: yöntemler

      Bitki materyali ve kimyasallar

      Ekili biberiye bitkilerinin hava kısımları, 2010 yılında Belgrad, Dr Josif Pančić, Tıbbi Bitkiler Araştırmaları Enstitüsü'nden temin edilmiştir. Bitkinin bir fiş örneği ( Rosmarinus officinalis L. 1753 subsp. officinalis No 2–1746, det.: Goran Anačkov) onaylandı ve Novi Sad Üniversitesi Fen Fakültesi Biyoloji ve Ekoloji Bölümü Herbaryumunda saklandı. Deneylerimizde kullanılan uçucu yağ, elde edilen bitki materyalinden izole edilmiştir.

      Karbon tetraklorür Merck'ten (Darmstadt, Almanya) elde edildi. Biyokimyasal testler için tüm kimyasallar, aksi belirtilmedikçe Sigma-Aldrich'ten (St Louis, MO, ABD) satın alındı. Uçucu yağın izolasyonu ve kalitatif ve kantitatif analizi

      Uçucu yağ, Avrupa Farmakopesi 4 [ 23 ] prosedürüne göre hidrodistilasyon yoluyla biberiyenin hava kısımlarından izole edilmiştir . n-Heksan toplama çözücüsü olarak kullanıldı ve daha sonra elde edilen uçucu yağdan vakum altında çıkarıldı.

      Uçucu yağın kimyasal bileşenlerinin tanımlanması ve miktar tayini, alev iyonizasyon tespiti (GC/FID) ve kütle spektrometrik tespiti (GC/MS) ile birlikte gaz kromatografisi ile gerçekleştirilmiştir. GC/FID analizi, bir otomatik numune alma cihazı ve bir bölünmüş/bölünmesiz enjeksiyon sistemi ile donatılmış bir Hewlett-Packard HP 5890 serisi II kromatografı kullanılarak gerçekleştirilmiştir. Bu çalışmada kullanılan kılcal kolon, alev iyonizasyon dedektörüne (FID) bağlı HP-5'tir (25 m x 0,32 mm; 0,52 μm film kalınlığı). Enjektör ve dedektör sıcaklıkları sırasıyla 250°C ve 300°C'ye ayarlandı ve kolon sıcaklığı, 4°C/dakika hızında 40 ila 260°C arasında programlandı. Taşıyıcı gaz olarak hidrojenin akış hızı 1 ml/dakika idi. Etanol (1 ul) içindeki %1'lik bir yağ çözeltisi numunesi, bölünmüş modda (bölünme oranı, 1:30) enjekte edildi. GC/MS analizi, GC/FID ile aynı analitik koşullar altında bir Hewlett-Packard HP G1800C serisi II GCD sistemi kullanılarak gerçekleştirilmiştir. Bu analizde HP-5MS kolonu (30 m x 0.25 mm; film kalınlığı 0.25 µm) ve taşıyıcı gaz olarak helyum kullanıldı. Sistem, 40-450 Da kütle (m/z) aralığında, 70 eV'de elektron iyonizasyon (EI) modunda çalıştırıldı.

      Uçucu yağ bileşenlerinin tanımlanması, elde edilen kütle spektrumları ve alıkonma indekslerinin NIST kütle spektrumları kitaplığından (IBM-AT, sürüm 2, 1990) ve literatür verileriyle karşılaştırılmasıyla gerçekleştirilmiştir. Kantitatif analiz, FID pik alanı normalleştirme yöntemiyle hesaplanan uçucu yağ bileşenlerinin yüzde bileşimini sağladı. Uçucu yağın in vitro antioksidan aktivitesinin ve toplam fenol içeriğinin değerlendirilmesi

      Biberiye uçucu yağının (REO) antioksidan aktivitesi, serbest radikal temizleme kapasitesi (RSC) olarak değerlendirildi. REO'nun bir elektron verme ve kararlı 1,1-difenil-2-pikrilhidrazil (DPPH) radikalini temizleme yeteneği araştırıldı [ 24 ]. Pozitif kontrol olarak a-tokoferolün uçucu yağ ve metanol solüsyonu DPPH solüsyonu ile karıştırıldı ve 60 dakika sonra kalan mor renkli DPPH radikali miktarı 515 nm'de spektrofotometrik olarak ölçüldü. Serbest radikal temizleme kapasitesi şu şekilde hesaplanmıştır: RSC = 100–100 * Bir numune /A boş , burada A boş , seyreltilmiş DPPH çözeltisinin ve A numunesinin absorbansıdıruçucu yağın/referansın absorbansıdır. Tüm testler üç kopya halinde yapıldı ve ortalama değerler dikkate alındı. DPPH radikalinin % 50 inhibisyonuna neden olmak için gereken numunenin konsantrasyonlarını temsil eden ICso değeri, elde edilen RSC değerlerinden lineer regresyon analizi ile tahmin edildi ve ml başına µl uçucu yağ olarak ifade edildi.

      REO'nun fenolik içeriği, Folin-Ciocalteu reaktifi [ 25 ] kullanılarak analiz edildi. Uçucu yağ, test tüpünde Folin-Ciocalteu reaktifi ve sodyum karbonat çözeltisi ile karıştırıldı. Vortekslendikten ve karanlıkta 2 saat inkübe edildikten sonra 740 nm'de absorbans ölçüldü. Toplam fenol içeriğinin tahmini üç kopya halinde yapıldı ve sonuç litre başına mg gallik asit eşdeğeri (GAE) olarak ifade edildi. Hayvanlar ve tedavi

      Deney, Belgrad Askeri Tıp Akademisi'nden alınan 200-250 g ağırlığında, her iki cinsiyetten 7-8 haftalık albino Wistar sıçanları üzerinde gerçekleştirildi. Sıçanlar, sabit bir ortam sıcaklığında (23°C) ve nemde (%30-50) 12 saatlik bir aydınlık-karanlık döngüsü altında standart laboratuvar kafeslerinde barındırıldı ve deneyler başlamadan önce 4 hafta boyunca adapte olmalarına izin verildi. . Hayvanlar standart pelet diyetinde (LM2, Veteriner Enstitüsü, Subotica, Sırbistan) tutuldu ve musluk suyuna ad libitum erişime izin verildi . Hayvan bakımı ve tüm deneysel işlemler, Yaşam Bilimleri Komisyonu, Ulusal Araştırma Konseyi (ABD) tarafından düzenlenen Laboratuar Hayvanlarının Bakımı ve Kullanımı Kılavuzuna uygun olarak yapılmıştır. Çalışma Novi Sad Üniversitesi Etik Kurulu tarafından onaylandı.

      REO'nun CCl 4 ile indüklenen karaciğer hasarı üzerindeki etkisini değerlendirmek için hayvanlar rastgele her biri altı birey içeren altı deney grubuna ayrıldı ve aşağıdaki gibi tedavi edildi:

      • Con S: Kontrol grubu, salin 1 ml/kg  ip .

      • Con CCl 4 : salin 1 ml/kg  ip . + tek bir CCl 4 doz 1 ml/kg  ip .

      • REO5: biberiye esansiyel yağı 5 mg/kg po .

      • REO5 + CCl 4 : biberiye esansiyel yağı 5 mg/kg po . + tek bir CCl 4 doz 1 ml/kg  ip .

      • REO10: biberiye esansiyel yağı 10 mg/kg po .

      • REO10 + CCl 4 : biberiye esansiyel yağı 10 mg/kg po . + tek bir CCl 4 doz 1 ml/kg  ip .

      REO, daha önce salin içinde süspanse edilmiş, per os gavaj ile uygulandı . Uygulanan dozların hacmindeki değişkenlik, sabit bir hacim (1 ml/kg) sağlamak için konsantrasyon ayarlanarak yönetildi. Yedi gün boyunca her gün REO ve salin uygulandı. 7. günde, son REO veya salin dozundan 1 saat sonra, hayvanlar, zeytinyağı (1:1, 1 ml/kg) içinde çözülmüş CCl 4 ile intraperitoneal olarak tedavi edildi. 24 saat sonra sıçanlara üretan (0.75 mg/kg) ile anestezi uygulandı ve kardiyoponksiyonla öldürüldü ve kan ve karaciğer örnekleri alındı ​​[ 26 ].]. Elde edilen serum, standart biyokimyasal parametrelerin belirlenmesi için kullanıldı. Karaciğer homojenatları, 4°C'de 1:3 (a/h) oranında Tris-HCl sakaroz tamponlu çözelti ile bir Potter homojenleştirici içinde homojenize edilen 1 g karaciğer dokusundan hazırlandı. Oksidatif stres parametreleri elde edilen karaciğer homojenatlarında analiz edildi. Serum biyokimyasal parametrelerinin belirlenmesi

      Lipid durumu ile ilgili biyokimyasal parametreler olarak toplam kolesterol ve trigliserit seviyeleri, karaciğer boşaltım fonksiyonunun bir belirteci olarak bilirubin seviyesi, alanin aminotransferaz (ALT) ve aspartat aminotransferaz (AST) dahil olmak üzere hepatoselüler hasarın enzim belirteçlerinin aktiviteleri ve üre konsantrasyonu , kreatinin ve ürik asit böbrek boşaltım fonksiyonunun göstergeleri olarak serumda belirlendi. Olympus AU 400 otoanalizöründe (Hamburg, Almanya) her numune için tüm analizler, sağlanan kılavuzlara göre iyi bilinen spektrofotometrik yöntemlere dayalı ticari olarak mevcut kitler kullanılarak üç kopya halinde gerçekleştirildi.

      Trigliseritler ve kolesterol, enzimatik kolorimetrik yöntemlerle nicelendirildi. Trigliseritlerin tayini için sırasıyla gliserol fosfat oksidaz-peroksidaz (GPO-POD) ve kolesterol oksidaz-peroksidaz (CHOD-POD) yöntemleri uygulandı. Serumdaki toplam ve direkt bilirubin konsantrasyonları, bir azobilirubin kompleksi oluşturmak üzere bilirubin ile 2,5-diklorofenildiazonyum tuzu arasındaki reaksiyona dayalı olarak kolorimetrik DPD yöntemiyle tahmin edildi. AST ve ALT aktiviteleri, standart IFCC yöntemleriyle ölçüldü. Serum kreatinin düzeyi modifiye Jaffe yöntemi ile ölçüldü ve üre ve ürik asit düzeyleri sırasıyla glutamat dehidrojenaz (GLDH-UV) ve ürikaz-peroksidaz kinetik yöntemleri kullanılarak belirlendi. Karaciğerde oksidatif durumun belirlenmesi

      Karaciğerdeki oksidatif durum, lipid peroksidasyonu (LPx) ve indirgenmiş glutatyon (GSH) seviyeleri ve katalaz (CAT), peroksidaz (Px), glutatyon peroksidaz (GPx) ve glutatyon dahil olmak üzere antioksidan enzimlerin aktiviteleri ölçülerek tahmin edildi. spektrofotometrik yöntemler kullanılarak karaciğer homojenatlarında redüktaz (GR). Tüm ölçümler, her numune için üç kopya halinde yapıldı.

      LPx'in yoğunluğu, Buege ve Aust [ 27 ] yöntemi kullanılarak peroksidasyon hasarına bağlı lipid yıkımının bir terminal ürünü olan malondialdehit miktarı ölçülerek tahmin edildi. GSH içeriği, Kapetanović ve Mieyal [ 28 ] yöntemine göre 5,5'-ditiyobis (2-nitrobenzoik asit) ile reaksiyonla belirlendi. CAT aktivitesi, 240 nm'de H202 bozunma hızının [ 29 ] ve Px aktivitesinin enzimin substratı olarak guaiacol [ 30 ] kullanılmasına dayanan yöntemle belirlendi . GPx ve GR'nin aktiviteleri Beutler [ 31 ] ve Goldberg ve Spooner'ın [ 32 ] yöntemleri izlenerek belirlendi.], sırasıyla. Bu testler, NADPH'nin 340 nm'de oksidasyonunun neden olduğu absorbanstaki düşüşün ölçülmesine dayanıyordu (UV tahlili). istatistiksel analiz

      Veriler, ortalama ± ortalamanın standart hatası (SEM) olarak ifade edilir. Çeşitli gruplar arasındaki gruplar arası varyasyon, tek yönlü varyans analizi (ANOVA) ve ardından Tukey'nin çoklu karşılaştırma testi ile ölçüldü. Sonuçlar, p < 0.05 olduğunda istatistiksel olarak anlamlı kabul edildi. Veriler, SPSS yazılımı, sürüm 19 (IBM SPSS, Chicago, IL, ABD) kullanılarak analiz edildi.

      Git: Sonuçlar

      REO kimyasal bileşimi

      Biberiyeden damıtılan uçucu yağ, uçuk sarı bir renge ve güçlü bir kokuya sahipti ve uçucu yağın elde edilen verimi %1.03 (kuru maddede h/a) idi. Tanımlanan kimyasal bileşenlerin toplam sayısı, toplam yağ içeriğinin %99,87'sini temsil eden 29'du. REO'nun yüzde bileşimi Tabloda sunulmuştur. 1. tablo 1

      Biberiye esansiyel yağının kimyasal bileşimi
      monoterpen hidrokarbonlar


      31.22
        üç tekerlekli bisiklet
      12.640
      6.82
      0,579
      0.23
        α-Tujene
      12.777
      7.00
      0,585
      0.13
        α-Pinen
      13.100
      7.19
      0.600
      11.51
        kamphen
      13.737
      7.62
      0.629
      4.55
        sabinen
      14.697
      8.47
      0.673
      0.05
        β-Pinen
      14.887
      8.50
      0.681
      8.16
        β-Mirsen
      15.292
      9.04
      0.700
      0.99
        α-Phellandren
      15.955
      9.43
      0.730
      0.19
        δ 3 -Koruyucu
      16.212
      9.62
      0.742
      0.13
        α-Terpinen
      16.456
      9.85
      0.753
      0.14
        p-Simen
      16.782
      10.13
      0.768
      1.23
        limonen
      16.970
      10.25
      0.777
      2.80
        γ-terpinen
      18.178
      11.30
      0.832
      0.92
        α-Terpinolen
      19.416
      12.31
      0.889
      0.19
      oksijenli monoterpenler


      63.88
        1,8-sineol
      17.124
      10.43
      0.784
      43.77
        Linalol
      19.746
      12.82
      0.904
      0.46
        kafur
      21.845
      14.30
      1.000
      12.53
        izoborneol
      22.318
      14.71
      1.022
      0,53
        Borneol
      22.655
      15.05
      1.037
      2.97
        Terpinen-4-ol
      23.059
      15.44
      1.056
      0,56
        α-Terpineol
      23.548
      15.93
      1.078
      1.53
        γ-terpineol
      23.802
      16.17
      1.090
      0.40
        Bornil asetat
      27.185
      19.14
      1.244
      1.13
      seskiterpen hidrokarbonlar


      4.77
        α-Kopaen
      30.598
      22.03
      1.401
      0.12
        uzunifolen
      31.866
      22.93
      1.459
      0.18
        β-Karyofillen
      32.240
      23.41
      1.476
      3.93
        α-Humulen
      33.406
      24.45
      1.529
      0.36
        Germacrene D
      34.029
      25.18
      1.558
      0.08
        δ-Cadinene
      35.528
      26.59
      1.626
      0.10
      Toplam tanımlanan


      99.87
      Tanımlanan bileşik sayısı 29
      Ayrı bir pencerede aç
      a RT-FID - GC/FID sisteminde tutma süresi; b RT-MS - GC/MS sisteminde alıkonma süresi; c RRT - kafura göre göreceli alıkonma süresi.

      Uçucu yağ, %95.10 monoterpen ve %4.77 seskiterpenden oluşan karmaşık bir karışım içerir. Esas olarak oksijenli monoterpenlerden (%63.88), ardından monoterpen hidrokarbonlardan (%31.22) ve seskiterpen hidrokarbonlardan (%4.77) oluştuğu bulundu. GC-FID ve GC-MS tarafından tanımlanan ve nicelenen ana bileşikler 1,8-sineol (%43,77), kafur (%12,53), a-pinen (%11,51), β-pinen (%8,16), kamfendir. (%4.55) ve β-karyofillen (%3.93) (Ek dosyalar 1 ve 2 ). REO'nun in vitro antioksidan aktivitesi

      REO'nun antioksidan aktivitesi, DPPH serbest radikal süpürme testi ile değerlendirildi ve sonuç, test solüsyonunda bulunan DPPH'nin %50'sini temizlemek için gereken antioksidan konsantrasyonu olarak tanımlanan IC50 değeri ile sunuldu. Sonuçlar, uçucu yağın 77.6 µl/ml IC50 değeri ile güçlü bir radikal süpürücü aktiviteye sahip olduğunu göstermiştir . 25.3 μg/ml IC50 değeri sergileyen , iyi bilinen güçlü antioksidan ve serbest radikal süpürücü a-tokoferol (E vitamini) ile bir karşılaştırma yapıldı . Buna göre, 1 μg α-tokoferol, çalışılan REO'nun 3,1 μl'sine eşdeğer bulundu.

      Biberiye esansiyel yağlarının antioksidan aktivitesinin kısmen fenolik grupların varlığından türetildiği bildirilmiştir [ 33 ]. Bu kimyasal bileşik sınıfının monoterpenlerin yanı sıra REO'nun serbest radikal temizleme kapasitesine katkıda bulunup bulunmadığını belirlemek için toplam fenol içeriğini ölçtük. İncelenen REO'nun toplam fenol içeriği, Folin-Ciocalteu yöntemi kullanılarak ölçüldü ve 153.35 mg GAE/l'lik nispeten küçük toplam fenol miktarı belirlendi. REO'nun CCl 4 ile indüklenen serum biyokimyasal parametreleri üzerindeki etkileri

      Çalışmamızda REO'nun karaciğerin metabolik fonksiyonu üzerindeki etkisini değerlendirmek için serumdaki trigliserit ve kolesterol konsantrasyonlarını araştırdık. CCl4 , 5 mg/kg'lık bir dozda REO'nun uygulanmasından sonra kısmen geri kazanılan trigliseritler ve kolesterol seviyelerinde hafif bir düşüşe neden oldu. Tek başına REO alımı, karaciğerin metabolik fonksiyonunu önemli ölçüde etkilemedi (Tablo 2). Tablo 2

      Biberiye esansiyel yağının serumdaki biyokimyasal parametreler üzerine etkileri
      Trigliseritler (mmol/l)
      0,81 ± 0,08
      0,52 ± 0,04
      0,79 ± 0,06
      0,63 ± 0,09
      1.03 ± 0.10 #
      0,42 ± 0,03 *
      Kolesterol (mmol/l)
      1.56 ± 0.08
      1,38 ± 0,08
      1,39 ± 0,03
      1,54 ± 0,06
      1,68 ± 0,06
      1,31 ± 0,13
      Toplam bilirubin (μmol/l)
      2.05 ± 0.15
      4.02 ± 0.35 *
      2,24 ± 0,06 #
      3,94 ± 0,35 *
      2,55 ± 0,07 #
      6,22 ± 0,50 *,#
      Direkt bilirubin (μmol/l)
      0,35 ± 0,03
      1.32 ± 0.24 *
      0,38 ± 0,05 #
      1,16 ± 0,15 *
      0,55 ± 0,02 #
      2,81 ± 0,29 *,#
      AST (U/l)
      125.3 ± 4.2
      3185,0 ± 477,9 *
      130.2 ± 6.2 #
      2701.7 ± 583.0 *
      143.7 ± 7.9 #
      1648,6 ± 104.4 *,#
      ALT (U/l)
      49,7 ± 1,7
      966,8 ± 244.4 *
      63,8 ± 4,3 #
      595.4 ± 143.7
      65,7 ± 2,1 #
      893,5 ± 200,8 *
      Üre (mmol/l)
      7,28 ± 0,25
      7,72 ± 0,17
      7,65 ± 0,08
      7,98 ± 0,29
      7,45 ± 0,24
      6,33 ± 0,29 #
      Kreatinin (μmol/l)
      46.0 ± 1.18
      53,2 ± 0,70 *
      44,2 ± 1,14 #
      51,5 ± 1,59 *
      50,3 ± 0,42
      47,7 ± 0,99 #
      Ürik asit (μmol/l) 62.0 ± 1.73 104.0 ± 12.02 * 53.0 ± 2.86 # 74,3 ± 5,86 # 60,7 ± 3,69 # 79.2 ± 6.65
      Ayrı bir pencerede aç
      Tüm değerler ortalama ± SEM olarak ifade edilir. (*) Con S grubundan önemli ölçüde farklı; ( # ) Con CCl 4 grubundan önemli ölçüde farklıdır ; p < 0.05.

      Hayvanların CCl 4 ile tedavisi, serumdaki hem toplam hem de direkt bilirubin seviyelerinde istatistiksel olarak anlamlı bir artışa neden oldu. Serumdaki artan bilirubin konsantrasyonu, karaciğerin bozulmuş boşaltım fonksiyonunu gösterir. Bu etki, 10 mg/kg dozunda REO ile birlikte tedaviden sonra ayrıca şiddetlendi. CCl 4'ün neden olduğu karaciğer hasarının meydana geldiğini doğrulamak için serumda AST ve ALT aktiviteleri ölçüldü. AST ve ALT aktiviteleri Con CCl 4'te sırasıyla 25 ve 19 kat arttısalinle tedavi edilen grupla karşılaştırıldığında grup ve bunun esas olarak bu enzimlerin hasarlı hepatositlerden kan dolaşımına sızmasından kaynaklandığı bilinmektedir. Hayvanların REO ile tedavisi, özellikle AST aktivitesinin CCl4 ile tedavi edilen gruba kıyasla önemli ölçüde azaldığı 10 mg/kg'lık bir dozda REO ile tedavi edilen grupta, hepatotoksisitenin bu parametrelerini hafifletti .

      Böbrek fonksiyonunun biyolojik belirteçleri olarak üre, kreatinin ve ürik asidin serum konsantrasyonları da incelenmiştir. Bu biyokimyasal parametreler CCl 4 ile tedavi edilen grupta arttı, bu da nefrotoksisitesini gösterir, ancak REO uygulamasından sonra önemli ölçüde düzeldi. REO'nun CCl 4 ile indüklenen oksidatif stres üzerindeki etkileri

      Sıçan karaciğerinde CCl 4'ün neden olduğu biyokimyasal değişiklikleri önlemek için REO'nun antioksidan potansiyelini analiz etmek için malondialdehit (MDA) ve glutatyon (GSH) düzeylerini ve katalaz (CAT), peroksidaz (Px) aktivitelerini ölçtük. REO etkilerinin biyolojik belirteçleri olarak glutatyon peroksidaz (GPx) ve glutatyon redüktaz (GR).

      Tek doz CCl 4 , uygulamadan 24 saat sonra sıçanların negatif kontrol grubuna kıyasla MDA seviyesinde 3.5 kat artışa neden oldu, bu da hücre zarlarının oksidatif hasarını düşündürdü. Buna, GSH konsantrasyonunda önemli bir azalma (0.73 ± 0.05 nmol ve kontrol grubunda 1.71 ± 0.17 nmol GSH/mg protein) ve karaciğer homojenatlarında artan aktivite gösteren GPx hariç incelenen tüm antioksidan enzimlerin aktiviteleri eşlik etti ( Figür 1).
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1472-6882-14-225-1.jpg
      Şekil 1
      Karaciğer homojenatlarında lipid peroksidasyonu (LPx), glutatyon (GSH), katalaz (CAT), peroksidaz (Px), glutatyon peroksidaz (GPx) ve glutatyon redüktaz (GR) seviyeleri. (*) Con S grubundan önemli ölçüde farklı; ( # ) Con CCl 4 grubundan önemli ölçüde farklıdır ; p < 0.05.

      Sonuçlarımız, günlük REO uygulamasının, akut karaciğer hasarının deneysel modelinde değiştirilmiş biyokimyasal parametreleri kısmen normalleştirebileceğini gösterdi. 7 gün boyunca her iki dozda da REO ile ön tedavi, karaciğer homojenatlarındaki oksidatif stresle ilişkili biyokimyasal parametreleri, özellikle REO'nun bu parametreleri negatif kontrol grubu değerlerine yakın tersine çevirdiği 10 mg/kg dozunda önemli ölçüde tersine çevirdi. Ayrıca, tek başına REO uygulaması da çalışılan oksidatif stres biyobelirteçlerinin çoğunu önemli ölçüde değiştirdi ve karaciğerin oksidatif durumunu iyileştirdi.

      Git: Tartışma

      Bu araştırmada, incelenen REO'nun kimyasal bileşimini, serbest radikal temizleme aktivitesini ve pro-oksidan ajan CCl4 tarafından indüklenen karaciğer hasarını iyileştirme potansiyelini belirledik . Biberiyeden izole edilen uçucu yağların kimyasal bileşimi ile ilgili daha önceki çalışmalar, üç ana kemotipin varlığına işaret etmektedir. Tunus, Türk, Fas ve İtalyan yağlarının ana bileşeni, genellikle %40'ın üzerinde olan 1,8-cineole iken, İspanyol, Fransız ve Yunan yağlarının çoğunda yaklaşık olarak eşit oranlarda 1,8-sineole, α-pinen ve kafur bulunur ( %20-30). Güney Amerika'da mirsen açısından zengin biberiye yağı kemotipi bildirilmiştir [ 13 ]]. Çalışmamızda incelenen biberiye esansiyel yağındaki ana bileşenler 1,8-sineol (%43,77), kafur (%12,53) ve α-pinen (%11,51) idi. Bu nedenle çalışmamızdaki REO, Fas/Tunus tipinde kategorize edilebilir. Biberiye esansiyel yağlarının kimyasal bileşiminde önemli varyasyonların rapor edildiğine dikkat edilmelidir. Uçucu yağların bileşimini, coğrafi köken, bitkinin bir kısmı, hasat mevsimi, dolayısıyla bitkinin fenolojik aşaması ve ayrıca uçucu yağ izolasyon yöntemi dahil olmak üzere etkileyen birçok faktör bulunmuştur [ 9 ]. Bu nedenle, REO'nun tüm etkileri, araştırılan yağın kimyasal bileşimi dikkate alınarak dikkatlice incelenmelidir.

      REO'nun in vitro antioksidan aktivitesini değerlendirdik ve IC50 değeri 77.6 µl/ml olan nispeten yüksek bir DPPH radikal süpürme kapasitesi gösterdik . Sonuçlarımız, biberiye uçucu yağlarının antioksidan aktivitesi hakkında rapor edilen önceki verilerle uyumludur. Araştırdığımız yağın serbest radikal temizleme aktivitesi ve kimyasal bileşimi, Kadri ve ark.'nın çalışmasında gösterildiği gibi, Güney Batı Tunus'ta yetiştirilen biberiyeden elde edilen uçucu yağa benzerdi. [ 10 ]. IC50 _değerler genellikle çalışmalar arasında önemli ölçüde farklılık gösterir ve bu durum biberiye esansiyel yağlarının farklı kimyasal bileşimleriyle açıklanabilir. Biberiye mirsen açısından zengin uçucu yağların kemotipinin en yüksek antioksidan aktiviteye sahip olduğu yakın zamanda gösterilmiştir [ 13 ]. REO'nun üç bileşeni (1,8-sineol, α-pinen ve β-pinen) ile serbest radikal süpürücü özelliklerini değerlendirmeyi ve karşılaştırmayı amaçlayan çalışmada, REO, tüm bileşenlerinden daha düşük IC50 değeri ve dolayısıyla daha yüksek antioksidan aktivite sergiledi. bileşenler ve sentetik antioksidan bütillenmiş hidroksitoluen (BHT) de [ 34]. Bu, ana bileşiklere ek olarak, küçük bileşenlerin de REO aktivitesine önemli ölçüde katkıda bulunabileceği anlamına gelir. Başka bir çalışmada, Akdeniz diyetinde yaygın olarak kullanılan beş bitkinin (kekik, kekik, karanfil, adaçayı ve biberiye) uçucu yağları, altı in vitro yöntem kullanılarak antioksidan özellikleri açısından test edildi ve sonuçlar REO'nun en yüksek demir şelatlama yeteneği. Ayrıca, REO, 225 mg GAE/l toplam fenol içeriği sergiledi [ 33], araştırılan diğer uçucu yağlara kıyasla düşük bir fenol kaynağı olarak kabul edilebilir ve çalışmamızın sonuçlarına nispeten benzerdir. Bu, oksijenli monoterpenlerin, muhtemelen yerleşik antioksidan özelliklere sahip monoterpenoid ketonların, REO'nun antioksidan kapasitesine en büyük katkıya sahip olabileceği anlamına gelir.

      REO'nun hepatoprotektif etkileri, serumda hepatosellüler hasarın enzim belirteçleri olarak ALT ve AST aktiviteleri ölçülerek araştırıldı. Çalışmamızda ayrıca REO'nun karaciğerin metabolik ve boşaltım fonksiyonları ile böbrek boşaltım fonksiyonları üzerindeki etkilerini de değerlendirdik. Son derece toksik ve pro-oksidan bir ajan olan CCl 4'ün , hepatositlerin ALT ve AST aktivitelerinde büyük artışlara ve serumdaki bilirubin içeriğinde yükselmeye neden olacak şekilde hasara yol açtığı iyi bilinmektedir . REO'nun, CCl 4 ile tedavi edilen grupla karşılaştırıldığında, karaciğer hasarının en spesifik belirteçleri olan serumdaki AST ve ALT aktivitelerini azaltarak her iki dozda da hepatoprotektif etkiler gösterdiği bulundu . Benzer şekilde, Sotelo-Félix ve ark. [ 20 ] ve Gutiérrez ve ark. [ 22] 200 mg/kg dozda biberiye metanolik ekstraktının hem akut karaciğer hasarı hem de karaciğer sirozu deneysel modellerinde yüksek ALT aktivitesini eski haline getirebileceğini gösterdi. İlginç bir şekilde, REO'nun 10 mg/kg dozunda CCl4 ile birlikte uygulanması, karaciğerin bozulmuş boşaltım fonksiyonunu gösteren serumdaki bilirubin değerlerinde alevlenme ile sonuçlanmıştır. Aksine, 5 mg/kg dozundaki REO bu etkiyi göstermedi. Bu, birçok monoterpenin doza bağlı etkiler göstermediği ve etkinlik gösteren en uygun doz aralığının bulunmasının gerekli olduğu yönündeki önceki bulgularla uyumludur [ 35 ].]. Çok sayıda terpenoid arasında, REO'muzda nispeten yüksek miktarda (%12.53) bulunan bisiklik bir monoterpen olan kafur, potansiyel olarak toksik bir bileşiktir ve küçük bir miktarı çocuklarda zehirlenmeye neden olabilir. Kafur nörotoksiktir ve ayrıca karaciğer için de toksiktir, ancak mekanizmalar hala açıklanmamıştır. Kafurun insan karaciğer mikrozomlarında 5-ekso-hidroksifenkon türevlerine oksitlendiği ve bunun 10 mg/kg dozunda REO uygulamasından sonra hepatik boşaltım bozukluğuna katkıda bulunabileceği gösterilmiştir [ 36 , 37 ]. Monoterpen α-pinen ayrıca yüksek dozlarda toksik etkiler gösterebilir. α-pinenin yüksek konsantrasyonda (200 mg/l) uygulandığında kültürlenmiş insan kan hücreleri üzerinde sitotoksisite sergilediği gösterilmiştir [ 38 ].] ve bu bileşiğin ayrıca porfirojenik olduğu ve bu nedenle hepatik hem sentezinde kusurları olanlar için özellikle tehlikeli olduğu doğrulanmıştır [ 39 ].

      AST ve ALT değerlerinin gösterdiği gibi hepatoprotektif etkilere ek olarak, çalışmamızda REO'nun nefroprotektif potansiyeli de gözlendi. 10 mg/kg'lık bir dozda REO alımı, Con CCl 4 grubuna kıyasla üre ve kreatinin seviyelerinde istatistiksel olarak anlamlı bir azalma üretti. Bu sonuçlar, REO'nun bozulmuş böbrek boşaltım fonksiyonunu geri kazanma yeteneğini göstermektedir. Bu, Sakr ve Lamfon'un [ 40 ] çalışmasının sonuçlarıyla uyumludur ve biberiyenin su ekstraktının, CCl 4 ile tedavi edilen hayvan grubuyla karşılaştırıldığında, sıçanların serumundaki üre ve kreatinin seviyelerini azaltabildiğini gösterir .

      Kimyasal kaynaklı karaciğer hasarında ve çeşitli karaciğer hastalıklarında reaktif oksijen türlerinin ( ROS) rolü göz önüne alındığında, oksidatif stres CCl4'ün hepatotoksisitesinde rol oynayan ana mekanizma olduğundan CCl4'ün neden olduğu akut karaciğer hasarı modelini kullandık . Bu bileşik, membran lipidlerinin peroksidasyonuna neden olan CCl 3 • ve Cl 3 COO • radikallerinin oluşumunun eşlik ettiği sitokrom P450'yi içeren indirgeyici halojensizleştirme yoluyla metabolize edilir . MDA, lipid peroksidasyonunun iyi bilinen ikincil ürünlerinden biridir ve hücre zarı hasarının bir göstergesi olarak kullanılmıştır. Şekilde gösterildiği gibi 1, REO, MDA seviyesinde CCl 4 ile indüklenen artışı önleme kabiliyeti gösterdi ; bu, REO'nun hücresel bütünlüğü koruyabildiğini ve bunun DPPH tahlili ile belirlenen serbest radikal süpürme aktivitesinin sonucu olabileceğini gösteriyor. Önceki bulgular, biberiyenin metanolik ekstraktlarının, kimyasal bileşim açısından REO'dan farklı olmasına rağmen, CCl 4 ile tedavi edilen sıçanların karaciğerindeki lipid peroksidasyonunu da engelleyebileceğini gösterdi [ 20 ]. Antilipoperoksidan aktiviteye ek olarak, REO'nun izole edilmiş sıçan hepatositlerinde hidrojen peroksit (H 2 O 2 )- ve 2,3-dimetoksi-1,4-naftokinon (DMNQ) ile indüklenen DNA oksidatif hasar düzeylerini verimli bir şekilde azalttığı da bulundu. ve testis hücreleri de [ 18 , 41].

      ROS'un etkileri, çeşitli enzimatik ve enzimatik olmayan mekanizmaları içeren antioksidan savunma sistemi ile dengelenir. GSH, hücrelerdeki ana enzimatik olmayan endojen antioksidandır. Antioksidan enzimler Px, GPx ve CAT, peroksitlerin alkollere veya suya indirgenmesini katalize eder. GR, peroksitlerin indirgenmesi sırasında üretilen glutatyon disülfidi (GSSG) glutatyonun sülfidril formuna (GSH) indirger [ 4 ]. Çalışmamızda REO'nun hepatositlerin antioksidan savunma sistemi üzerindeki etkilerini de araştırdık ve sonuçlarımız CCl 4 uygulamasınınkaraciğer homojenatlarında GSH seviyesinin önemli ölçüde azalmasına neden oldu. Birkaç antioksidan enzim için bir kofaktör olarak hizmet etmenin yanı sıra, GSH onları temizlemek için belirli ROS ile doğrudan etkileşime girebilir ve bu nedenle CCl 4 metabolitlerinin detoksifikasyonunda kullanılır. GSH'nin tükenmesine, aşırı ROS üretiminin neden olduğu inaktivasyonlarıyla açıklanabilecek CAT, Px ve GR aktivitelerinde önemli bir azalma eşlik etti. İlginç bir şekilde, antioksidan enzim GPx'in aktivitesi, CCl4 uygulamasından sonra karaciğerde arttı . Hsiao ve arkadaşlarının çalışmasında da benzer sonuçlar elde edilmiştir. [ 42 ], burada CCl 4'ün gösterildiğiGPx aktivitesinde indüklenen artış ve CAT aktivitesinde azalma. Bu enzimler, oksidatif hücre hasarına karşı savunmada aktive edilir. CAT, karaciğerde ksenobiyotiklerin redoks işleminden türetilen ROS'un elimine edilmesinde önemli bir role sahiptir ve CAT'nin lipid peroksitler tarafından kolayca inaktive edildiği öne sürülmüştür [ 43 ]. Öte yandan, oksidatif stres koşulları altında, GPx, hepatositlerin oksidatif hasara adaptif yanıtı olarak yukarı regüle edilebilir ve daha sonra, çalışmamızın sonuçlarına göre GSH büyük ölçüde tüketilir. Biberiyeden izole edilen uçucu yağ, özellikle 10 mg/kg dozunda karaciğerin oksidatif durumuna atıfta bulunan tüm bu biyokimyasal parametreleri önemli ölçüde tersine çevirmiştir.

      Biberiyeden izole edilen incelenen uçucu yağın hepatoprotektif aktivitesi, ana bileşiği olarak 1,8-sineole atfedilebilir. Bu monoterpenin düz kas gevşetici, antiinflamatuar, antioksidan ve hipotansif gibi çeşitli farmakolojik etkileri olduğu rapor edilmiştir. Erken apoptoz ve ardından hepatositlerin parçalanması ile karakterize edilen D-galaktozamin/lipopolisakkarit tarafından indüklenen septik şok sendromunun in vivo bir fare modelinde, 1,8-sineol sadece karaciğer ağırlığındaki artışı ve serum transaminaz aktivitesindeki yükselmeyi bastırmakla kalmadı, aynı zamanda ayrıca nekroz ve kanamayı deksametazondan daha fazla önlemiştir. Hepatoproteksiyonun, TNF-α serum konsantrasyonunda bir azalma ile ilişkili olduğu öne sürülmüştür [ 44]. 30 gün boyunca çevresel kirletici 2,3,7,8-tetracholorodibenzo-p-dioxin (TCDD) ile tedavi edilen sıçanlarda, antioksidan enzimler GPx ve CAT ve karaciğerdeki GSH seviyeleri önemli ölçüde azalırken, MDA seviyeleri önemli ölçüde arttı. tedavi edilmeyen grupla karşılaştırıldığında. TCDD ile birlikte verildiğinde 1,8-sineol, GPx, CAT, GSH düzeylerini artırırken, MDA konsantrasyonunu kontrol grubu düzeyine yaklaştırarak, 1,8'in indüklediği hepatoproteksiyon mekanizmalarından biri olarak antioksidan savunma sistemlerinin aktivasyonunu düşündürür. -sineol [ 45]. Benzer şekilde, polimorfonükleer lökosit birikiminin bir belirteci olan miyeloperoksidaz aktivitesini azaltabildiğinden ve GSH'nin doku seviyelerini eski haline getirebildiğinden, TNBS ile indüklenen koliti olan sıçanlarda 1,8-sineol tedavisinin kolonik oksidatif dengeyi iyileştirdiği bulundu. ana hücre içi antioksidan [ 46 ]. 1,8-sineolün yanı sıra, çalışmamızda incelenen uçucu yağda nispeten yüksek miktarda (%11,51) bulunan bisiklik bir monoterpen olan α-pinen için de antioksidan aktivite belirlendi ve bu bileşik karaciğer koruyucu aktivitesine katkıda bulunabilir. REO da [ 38]. Uçucu yağda küçük miktarlarda bulunan çeşitli bileşiklerin katkısı da karaciğer üzerindeki etkiler için önemli olabilir ve bunların etki mekanizmaları hala açıklanmamıştır.

      Git: Sonuçlar

      Özetle, mevcut sonuçlar, DPPH tahlili ile belirlenen serbest radikal süpürme aktivitesi sergileyen REO uygulamasının CCl4'ün önlenmesi üzerinde faydalı etkiler uyguladığını göstermektedir .- lipid peroksidasyonunun ve dolayısıyla hücre zarlarının yaralanmasının kapsamını sınırlayarak sıçanlarda indüklenen hepatotoksisite. İncelenen antioksidan enzimlerin aktiviteleri üzerindeki önemli etkisi göz önüne alındığında, REO'nun hepatoprotektif etkilerine sadece zararlı serbest radikallerin temizlenmesi yoluyla değil, aynı zamanda fizyolojik savunma mekanizmalarının aktivasyonu yoluyla da aracılık ettiği açıktır. Biberiyeden elde edilen uçucu yağların kimyasal bileşimlerinde önemli farklılıklar olduğu ve bu nedenle REO'nun çeşitli karaciğer hastalıklarının önlenmesinde ve/veya tedavisinde kullanılması, etken maddelerin tanımlanmasını ve bu yağlarla ilgili daha ileri araştırmaları gerektirdiğini vurgulamak gerekir. onların etki mekanizmaları.

      Git: rekabet eden çıkarlar

      Yazarlar, rekabet eden çıkarları olmadığını beyan eder.

      Git: Yazar katkıları

      Deneysel çalışma, tüm testleri tasarlayan AR'nin gözetiminde IM tarafından yapıldı. TĆ antioksidan enzim analizlerini gerçekleştirdi. SV, deneylerin bir kısmını gerçekleştirdi. NP verileri analiz etti ve makaleyi yazdı. MM projenin koordinatörüydü. Tüm yazarlar son makaleyi okudu ve onayladı.

      Git: yayın öncesi geçmişi

      Bu makalenin yayın öncesi geçmişine buradan erişilebilir:

      http://www.biomedcentral.com/1472-6882/14/225/prepub


      Git: Ek materyal

      Ek dosya 1:
      Kafur ve 29 bileşenin nispi miktarlarına göre nispi tutma süreleri (RRT) veren rosmary uçucu yağının normalleştirilmiş gaz kromatogramı.
      Dosya (9.7K, zip) için buraya tıklayın
      Ek dosya 2:
      Biberiye esansiyel yağının kütle spektrumu.
      Dosya için tıklayınız (13K, zip)
      Git: Teşekkür

      Bu çalışma, Sırbistan Cumhuriyeti Eğitim, Bilim ve Teknolojik Geliştirme Bakanlığı (41012 numaralı proje) ve Voyvodina Özerk Bölgesi İl Bilim ve Teknolojik Gelişim Sekreterliği (proje No 114-451-3551/2013-02) tarafından desteklenmiştir. Yazarlar, bitki materyalinin belirlenmesi için Novi Sad Üniversitesi Fen Fakültesi Biyoloji ve Ekoloji Bölümü'nden Goran Anačkov'a minnettardır.

      Git: Referanslar

      • Corsini A, Bortolini M. İlaca bağlı karaciğer hasarı: ilaç metabolizması ve taşınmasının rolü. J Clin Pharmacol. 2013; 53 :463-474. [ PubMed ] [ Google Akademik ]
      • Gu X, Manautou JE. Kimyasal karaciğer hasarının altında yatan moleküler mekanizmalar. Uzman Rev Mol Med. 2012; 14 :e4. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      • Tanikawa K, Torimura T. Karaciğer hastalıklarında oksidatif stres üzerine çalışmalar: karaciğer araştırmalarında gelecekteki önemli eğilimler. Med Mol Morphol. 2006; 39 :22-27. doi: 10.1007/s00795-006-0313-z. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Zhu R, Wang Y, Zhang L, Guo Q. Oksidatif stres ve karaciğer hastalığı. Hepatol Araş. 2012; 42 :741–749. doi: 10.1111/j.1872-034X.2012.00996.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Zhang A, Sun H, Wang X. Karaciğer hastalıklarının tedavisi için bitkilerden elde edilen doğal ürünlerdeki son gelişmeler. Eur J Med Chem. 2013; 63 :570–577. [ PubMed ] [ Google Akademik ]
      • Al-Sereiti MR, Abu-Amer KM, Sen P. Biberiye farmakolojisi (Rosmarinus officinalis Linn.) ve terapötik potansiyelleri. Hint J Exp Biol. 1999; 37 :124–130. [ PubMed ] [ Google Akademik ]
      • Yu MH, Choi JH, Chae IG, Im HG, Yang SA, More K, Lee IS, Lee J. LPS ile indüklenen inflamatuar aktivitelerin Rosmarinus officinalis L. Food Chem. 2013; 136 :1047-1054. doi: 10.1016/j.foodchem.2012.08.085. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Ngo SN, Williams DB, RJ Başkanı. Biberiye ve kanser önleme: klinik öncesi bakış açıları. Crit Rev Gıda Bilimi Nutr. 2011; 51 :946–954. doi: 10.1080/10408398.2010.490883. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Teixeira B, Marques A, Ramos C, Neng NR, Nogueira JMF, Saraiva JA, Nunes ML. Ticari uçucu yağların kimyasal bileşimi ve antibakteriyel ve antioksidan özellikleri. Sanayi Mahsul Prod. 2013; 43 :587–595. [ Google Akademik ]
      • Kadri A, Zarai Z, Ben Chobba I, Bekir A, Gharsallah N, Damak M, Gdoura R. Güney-Batı Tunus'tan yetiştirilen Rosmarinus officinalis L. uçucu yağının kimyasal bileşenleri ve antioksidan özellikleri. J Med Tesisleri Arş. 2011; 5 :5999–6004. [ Google Akademik ]
      • Bozin B, Mimica-Dukic N, Samojlik I, Jovin E. Biberiye ve adaçayı (Rosmarinus officinalis L. ve Salvia officinalis L., Lamiaceae) uçucu yağlarının antimikrobiyal ve antioksidan özellikleri. J Tarım Gıda Kimya. 2007; 55 :7879–7885. doi: 10.1021/jf0715323. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Prabuseenivasan S, Jayakumar M, Ignacimuthu S. Bazı bitki esansiyel yağlarının in vitro antibakteriyel aktivitesi. BMC Tamamlayıcı Alter Med. 2006; 6:39 . doi: 10.1186/1472-6882-6-39. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Ojeda-Sana AM, van Baren CM, Elechosa MA, Juarez MA, Moreno S. Biberiye esansiyel yağlarının ve ana bileşenlerinin antibakteriyel ve antioksidan aktivitelerine ilişkin yeni görüşler. Gıda Kontrolü. 2013; 31 :189–195. doi: 10.1016/j.foodcont.2012.09.022. [ CrossRef ] [ Google Akademik ]
      • Avrupa İlaç Ajansı. Rosmarinus officinalis L., aetheroleum üzerine topluluk bitkisel monografisi. 2010. [ http://www.ema.europa.eu/docs/en_GB/...C500101493.pdf ]
      • Takaki I, Bersani-Amado LE, Vendruscolo A, Sartoretto SM, Diniz SP, Bersani-Amado CA, Cuman RK. Deneysel hayvan modellerinde Rosmarinus officinalis L. uçucu yağının anti-inflamatuar ve antinosiseptif etkileri. J Med Gıda. 2008; 11 :741–746. doi: 10.1089/jmf.2007.0524. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Machado DG, Cunha MP, Neis VB, Balen GO, Colla A, Bettio LE, Oliveira A, Pazini FL, Dalmarco JB, Simionatto EL, Pizzolatti MG, Rodrigues AL. Rosmarinus officinalis L.'den izole edilen fraksiyonlar, uçucu yağ, karnosol ve betulinik asidin antidepresan benzeri etkileri. Food Chem. 2013; 136 :999–1005. doi: 10.1016/j.foodchem.2012.09.028. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Moss M, Cook J, Wesnes K, Duckett P. Biberiye ve lavanta esansiyel yağlarının aromaları, sağlıklı yetişkinlerde biliş ve ruh halini farklı şekilde etkiler. Int J Neurosci. 2003; 113 :15–38. doi: 10.1080/00207450390161903. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Slameňová D, Horváthová E, Kováčiková Z, Kozics K, Hunáková L. Esansiyel biberiye yağı, testis hücrelerini H2O2 ve DMNQ'nun DNA'ya zarar veren etkilerine karşı korur. Gıda Kimyası 2011; 129 :64-70. doi: 10.1016/j.foodchem.2011.04.020. [ CrossRef ] [ Google Akademik ]
      • Wang W, Li N, Luo M, Zu Y, Efferth T. Rosmarinus officinalis L. esansiyel yağının ana bileşenlerine kıyasla antibakteriyel aktivitesi ve antikanser aktivitesi. Moleküller. 2012; 17 :2704–2713. doi: 10.3390/moleküller17032704. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Sotelo-Félix JI, Martinez-Fong D, Muriel P, Santillán RL, Castillo D, Yahuaca P. Rosmarinus officinalis'in (Lamiaceae) sıçandaki karbon tetraklorür kaynaklı akut hepatotoksisitenin hafifletilmesindeki etkinliğinin değerlendirilmesi. J Etnofarmakol. 2002; 81 :145–154. doi: 10.1016/S0378-8741(02)00090-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Amin A, Hamza AA. Sıçanlarda azatiyoprinin neden olduğu toksisite üzerine Hibiscus, Rosmarinus ve Salvia'nın hepatoprotektif etkileri. Hayat Bilimi. 2005; 77 :266-278. doi: 10.1016/j.lfs.2004.09.048. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Gutiérrez R, Alvarado JL, Presno M, Pérez-Veyna O, Serrano CJ, Yahuaca P. CCl4 kaynaklı karaciğer sirozunda Rosmarinus officinalis tarafından oksidatif stres modülasyonu. Fitoter Araş. 2010; 24 :595-601. [ PubMed ] [ Google Akademik ]
      • Avrupa Konseyi, Avrupa Farmakopesi Komisyonu Avrupa İlaç ve Sağlık Hizmetleri Kalite Müdürlüğü: Avrupa Farmakopesi. 4. Strazburg: Avrupa Konseyi; 2002. [ Google Akademik ]
      • Brand-Wiliams W, Cuvelier ME, Berset C. Antioksidan aktiviteyi değerlendirmek için bir serbest radikal yönteminin kullanılması. LWT - Gıda Bilimi Teknol. 1995; 28 :25–30. doi: 10.1016/S0023-6438(95)80008-5. [ CrossRef ] [ Google Akademik ]
      • Kroyer GT. Antioksidan aktif ve fonksiyonel gıda maddesi olarak Kırmızı Yonca özü. Innov Gıda Bilimi Ortaya Çıkan Teknoloji. 2004; 5 :101–105. doi: 10.1016/S1466-8564(03)00040-7. [ CrossRef ] [ Google Akademik ]
      • Popović M, Kaurinović B, Jakovljević V, Rašković A. Karahindiba çiçeği ekstraktlarının CCl4 ile tedavi edilen sıçanlarda oksidatif stresin bazı biyokimyasal parametreleri üzerindeki etkisi. Fresen Çevre Boğası. 2008; 17 :74-78. [ Google Akademik ]
      • Buege AJ, Aust DS. İçinde: Enzimolojide Yöntemler. Fleischer S, Parker L, editör. New York: Akademik Basın; 1978. Mikrozomal lipid peroksidasyonu. [ Google Akademik ]
      • Kapetanović IM, Mieyal JJ. Asetaminofen kaynaklı hepatotoksisitenin fenasetin ve alkoksi analogları tarafından inhibisyonu. J Pharmacol Exp Ther. 1979; 209 :25–30. [ PubMed ] [ Google Akademik ]
      • Biralar RFJ, Sizer JW. Hidrojen peroksitin katalaz tarafından parçalanmasının ölçülmesi için spektrofotometrik yöntem. J Biol Chem. 1950; 195 :133–140. [ PubMed ] [ Google Akademik ]
      • Simon LM, Fatrai Z, Jonas DE, Matkovics B. Phaseolus vulgaris'in gelişimi sırasında metabolizma enzimlerinin incelenmesi. Bitki Fizyol Biyokimyası. 1974; 166 :389-393. [ Google Akademik ]
      • Beutler E. Kırmızı Hücre Metabolizması: Biyokimyasal yöntemler el kitabı. New York: Grune & Stratton; 1984. [ Google Akademik ]
      • Goldberg DM, Spooner RJ. İçinde: Enzimatik analiz yöntemleri. Cilt 111. 3. Bergmeyer HU, Bergmeyer J, GraRI M, editör. Weinhem, Almanya: Verlag Chemie; 1983. Glutatyon redüktaz; s. 258–265. [ Google Akademik ]
      • Viuda-Martos M, Ruiz Navajas Y, Sánchez Zapata E, Fernández-López J, Pérez-Álvarez JA. Akdeniz diyetinde yaygın olarak kullanılan beş baharat bitkisinin uçucu yağlarının antioksidan aktivitesi. Lezzet Frag J. 2010; 25 :13-19. doi: 10.1002/ffj.1951. [ CrossRef ] [ Google Akademik ]
      • Wang W, Wu N, Zu YG, Fu YJ. Rosmarinus officinalis L. uçucu yağının ana bileşenlerine kıyasla antioksidan aktivitesi. Gıda Kimyası 2008; 108 :1019–1022. doi: 10.1016/j.foodchem.2007.11.046. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Guimarães AG, Quintans JS, Quintans LJ Jr. Analjezik aktiviteye sahip monoterpenler – sistematik bir inceleme. Fitoter Araş. 2013; 27 :1–15. doi: 10.1002/ptr.4686. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Tisserand R, Young R. Esansiyel Yağ Güvenliği: Sağlık Profesyonelleri İçin Bir Kılavuz. 2. Londra: Churchill Livingstone; 2013. [ Google Akademik ]
      • Gyoubu K, Miyazawa M. İnsan karaciğer mikrozomları ve CYP2A6 kullanılarak (-)-kafurun in vitro metabolizması. Biol Ecz Boğa. 2007; 30 :230–233. doi: 10.1248/bpb.30.230. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Türkez H, Aydın E. α-pinenin sitogenetik ve oksidatif etkilerinin in vitro değerlendirilmesi. Toksikol Ind Sağlık. Basında. [ PubMed ]
      • Bonkovsky HL, Kablo EE, Kablo JW, Donohue SE, Beyaz EC, Greene YJ, Lambrecht RW, Srivastava KK, Arnold WN. Terpenler kafur, pinen ve tujonun porfirojenik özellikleri (pelin ve Vincent van Gogh'un hastalığına yönelik tarihsel etkileri hakkında bir not ile) Biochem Pharmacol. 1992; 43 :2359–2368. doi: 10.1016/0006-2952(92)90314-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Sakr SA, Lamfon HA. Biberiye (Rosmarinus Officinalis) yaprağı ekstresinin albino sıçanlarda karbon tetraklorür kaynaklı nefrotoksisite üzerindeki koruyucu etkisi. Life Sci J. 2012; 9 :779–785. [ Google Akademik ]
      • Horváthová E, Slameňová D, Navarová J. Biberiye esansiyel yağının uygulanması, sıçan hepatositlerinin DNA'ya zarar veren oksidatif ajanlara karşı direncini arttırır. Gıda Kimyası 2010; 123 :151–156. doi: 10.1016/j.foodchem.2010.04.022. [ CrossRef ] [ Google Akademik ]
      • Hsiao G, Shen MY, Lin KH, Lan MH, Wu LY, Chou DS, Lin CH, Su CH, Sheu JR. Antrodia camphorata özütünün antioksidan ve hepatoprotektif etkileri. J Tarım Gıda Kimya. 2003; 51 :3302-3308. doi: 10.1021/jf021159t. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Halliwell B, Gutteridge JM. Oksijen toksisitesi, oksijen radikalleri, geçiş metalleri ve hastalık. Biochem J. 1984; 219 :1–14. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      • Santos FA, Silva RM, Tomé AR, Rao VS, Pompeu MM, Teixeira MJ, De Freitas LA, De Souza VL. 1,8-sineol, endotoksemik şokun in-vivo murin modelinde karaciğer yetmezliğine karşı koruma sağlar. J Pharm Pharmacol. 2001; 53 :505–511. doi: 10.1211/0022357011775604. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Çiftçi O, Özdemir İ, Tanyıldızı S, Yıldız S, Oğuztürk H. Kurkumin, β-mirsen ve 1,8-sineolün sıçan karaciğerinde 2,3,7,8-tetraklorodibenzo-p-dioksin kaynaklı oksidatif strese karşı antioksidan etkileri . Toksikol Ind Sağlık. 2011; 27 :447-453. doi: 10.1177/0748233710388452. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      • Santos FA, Silva RM, Campos AR, De Araújo RP, Lima Júnior RC, Rao VS. Bir monoterpen oksit olan 1,8-sineole (okaliptol), akut TNBS-kolitli sıçanlarda kolonik hasarı hafifletir. Gıda Kimyasal Toksikol. 2004; 42 :579-584. doi: 10.1016/j.fct.2003.11.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        BİBERİYE İle Serbest Radikaller Ve Yemekte Kullanımı


        BİBERİYE İle Düşük Tansiyon Ve Antioksidan


        Biberiye ( Rosmarinus officinalis L.) Özü ve Biberiye Özü Polifenollerinin Antikanser Etkileri

        Jessy Moore , 1 Michael Yousef , 1 ve Evangelia Tsiani 1, 2, *
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
        Git: Soyut

        Kanser hücreleri, gelişmiş büyüme oranları ve apoptoza karşı direnç gösterir. Kanser hücrelerinin, programlanmış hücre ölümü/apoptozundan kaçınırken homeostazdan kaçma ve kontrolsüz bir şekilde çoğalma yeteneği, hücre çoğalması ve hayatta kalmasıyla ilgili yolları düzenleyen anahtar sinyal moleküllerine yapılan mutasyonlar yoluyla elde edilir. Gıda bileşenleri de dahil olmak üzere bitki kökenli bileşikler, kanserin önlenmesi ve tedavisi için ajanlar olarak kullanım için bilimsel ilgi çekmiştir. Doğal ürünlerin araştırılması, yeni antikanser ajanlarını değerlendirmenin yanı sıra yeni ve potansiyel olarak ilgili etki mekanizmalarını anlamak için büyük bir fırsat sunuyor. Biberiye özütünün antioksidan, antiinflamatuar, antidiyabetik ve antikanser özelliklerine sahip olduğu bildirilmiştir. Biberiye özütü, en yüksek konsantrasyonlarda bulunan karnosik asit ve rosmarinik asit içeren birçok polifenol içerir. Bu derleme, biberiye özütü ve biberiye özü polifenolleri karnosik asit ve rosmarinik asidin antikanser etkilerine ve bunların temel sinyal molekülleri üzerindeki etkilerine odaklanan mevcut in vitro ve in vivo çalışmaları özetlemektedir.

        Anahtar kelimeler: biberiye özü, karnosik asit, rosmarinik asit, kanser, çoğalma, hayatta kalma, hücre sinyali
        Git: 1. Giriş

        Muhtemelen kanser hücrelerinin en temel özellikleri, onların gelişmiş proliferatif ve azalmış apoptotik kapasiteleridir [ 1]. Normal hücreler, hücre büyümesini/çoğalmasını düzenleyen büyüme faktörlerinin üretimini ve salınımını sıkı bir şekilde kontrol eder, böylece hücresel homeostazı ve normal doku mimarisinin korunmasını sağlar. Kanser hücrelerinde bu sinyaller düzensizleşir ve böylece hücre içindeki homeostaz bozulur. Kanser hücrelerinin proliferasyonu çeşitli yollarla arttırılabilir. Kanser hücreleri, aynı kökenli reseptörlerin ekspresyonu yoluyla yanıt verebilecekleri büyüme faktörleri üretebilir. Kanser hücrelerinin yüzeyinde görüntülenen reseptör proteinlerinin seviyesi de yükseltilebilir, bu da bu hücreleri büyüme faktörlerine aşırı duyarlı hale getirir; aynı sonuç, büyüme faktörü bağlanmasından bağımsız olarak aşağı akış sinyal yollarının aktivasyonunu kolaylaştıran reseptör moleküllerindeki değişikliklerden kaynaklanabilir [ 1]. Alternatif olarak, kanser hücreleri, sinyal yollarında mutasyonlar/değişiklikler ile sonuçlanan normal komşu hücrelere sinyal gönderebilir. Bu değişiklikler, kanser hücrelerine geri verilen büyüme faktörlerinin salınımını uyararak çoğalmalarını arttırır. , 3]. Epidermal GFR (EGFR) gibi büyüme faktörü reseptörleri (GFR), intrinsik tirozin kinaz (TK) aktivitesine sahip plazma membran proteinleridir. Büyüme faktörü bağlanması, reseptörün otofosforilasyonuna neden olan reseptörün tirozin kinaz aktivitesini arttırır. Reseptörün fosforile edilmiş tirozin kalıntıları, Src-homology 2 (SH2) alanlarını içeren hücre içi proteinler için kenetlenme yerleri olarak işlev görür ve fosfatidilinositol 3-kinaz (PI3K-Akt) ve Ras-mitojen ile aktifleştirilmiş protein gibi hücre içi sinyalleşme kaskadlarının uyarılmasına yol açar. kinaz (Ras-MAPK) kaskadları, apoptozun proliferasyonunun artması ve inhibisyonu/gelişmiş hayatta kalma ile sonuçlanır.

        Kanserin gelişimi üç aşamaya ayrılır: başlama, ilerleme ve ilerleme. Başlatma, hücrenin kanserli hale gelmesini sağlayan bir hücrenin genetik yapısındaki bir değişikliği içerir. Teşvik aşaması sırasında, çeşitli faktörler tek bir mutasyona uğramış hücrenin hayatta kalmasına (apoptoza direnmesine) ve çoğalmasına izin vererek bir tümörün büyümesini teşvik eder. Son olarak, kanserli hücre çoğalıp bir tümöre dönüştükçe hastalık durumu ilerler. Normal olarak, sağlıklı hücreler neoplastik bir duruma ilerlerler, malign olmalarını sağlayan bir dizi ayırt edici yetenek kazanırlar. Hanahan ve Weinberg tarafından önerilen 6 kanserin ayırt edici özelliği, proliferatif sinyallemeyi sürdürmek, büyüme baskılayıcılardan kaçınmak, hücre ölümüne direnmek, replikatif ölümsüzlüğü sağlamak, anjiyogenezi indüklemek ve istila ve metastazı aktive etmektir.1 ]. Tümörler ilerledikçe ve daha agresif hale geldikçe, bu ayırt edici özelliklerden daha fazlasını sergilemeye başlayacaklardır. Mevcut antikanser ajanlar, karsinogenezin hangi aşamasını hedeflediklerine bağlı olarak kemopreventif veya kemoterapötik olarak sınıflandırılabilir. Antikanser ajanların kemopreventif potansiyelini araştırmak için kültür veya hayvan modellerindeki hücreler bir kanserojene maruz kalmadan önce bir antikanser ajanına maruz bırakılabilir. Bu, bir antikanser ajanının kanserin başlama ve ilerleme aşamaları üzerindeki etkisinin kanıtını sağlar. Alternatif olarak, kültür veya hayvan modellerindeki hücreler, bir antikanser ajanı ile tedavi edilmeden önce neoplastik bir durum oluşturmak için bir kanserojene maruz bırakılabilir ve bu, bir antikanser ajanının kanserin ilerlemesi üzerindeki etkisinin kanıtını sağlar.

        Bitkilerden elde edilen doğal ürünlerin taranmasıyla birçok farmasötik ajan keşfedilmiştir. Mandrake bitkisinden ve Queen Anne's dantelinden izole edilen kemoterapötik etoposid ve Nyssaceae ağacının odunu ve kabuğundan izole edilen paklitaksel ve doketaksel gibi bu ilaçlardan bazıları şu anda kanser tedavisinde başarıyla kullanılmaktadır [ 4 ]. Doğal ürünlerin araştırılması, yeni kimyasal antikanser ajan sınıflarını değerlendirmenin yanı sıra yeni ve potansiyel olarak ilgili etki mekanizmalarını incelemek için büyük bir fırsat sunuyor. Bizimki de dahil olmak üzere birçok laboratuvar, leylaktan türetilen bir ilaç olan metforminin antikanser özelliklere sahip olduğunu göstermiştir [ 5 ]. Ayrıca şarapta yüksek konsantrasyonlarda bulunan polifenol resveratrolün in vitro ve in vivo olarak antikanser etkileri olduğu gösterilmiştir.6 , 7 , 8 , 9 , 10 ]. Önemli olarak, metformin ve resveratrol hem kemopreventif hem de kemoterapötik etkiler gösterir.

        Nane ailesi Lamiaceae'nin bir üyesi olan Rosmarinus Officinalis L. bitkisi , Akdeniz bölgesine özgüdür ve birçok mutfak ve tıbbi kullanıma sahiptir. Biberiye özünde (RE) bulunan ana polifenoller arasında diterpenler karnosik asit (CA) ve rosmarinik asit (RA) bulunur [ 11 ]. Biberiye özütü ve polifenolleri CA ve RA, yakın zamanda araştırılmış ve güçlü antikanser etkiler gösterdiği bulunmuştur (yakın zamanda [ 12 , 13 , 14'te gözden geçirilmiştir).]). Sistematik bir literatür taraması oluşturmak için çevrimiçi arama motoru Pubmed'i kullandık. Anahtar sözcükleri aradık: biberiye özü ve kanser, karnosik asit ve kanser, rosmarinik asit ve kanser. Ayrıca meme kanseri, kolon kanseri gibi kanser alt türlerini de aramamıza anahtar kelime olarak dahil ettik. Bu derlemeye konumuzla ilgili ve 2000 yılından sonra yayınlanan tüm çalışmalar dahil edilmiştir. Aşağıdaki bölümlerde, RE'nin ve ana polifenollerinin etkilerine ilişkin in vitro ve in vivo çalışmalar özetlenmiş ve kanser hücre tipine göre en erkenden en yeniye doğru kronolojik sıraya göre sıralanmıştır. Literatürün nasıl ilerlediğini ve şu anda hangi bilgilerin mevcut olduğunu vurgulamak için sıralama yöntemi olarak kronoloji seçilmiştir. Başlangıçta RE'nin antikanser etkilerini inceleyen çalışmalara odaklandık, Daha sonra etki mekanizmalarının araştırıldığı çalışmaları vurguladık ve CA ve RA polifenollerini kullanan çalışmaları ayrı ayrı özetledik. Metinde sunulan çalışmalar da özetlenir, düzenlenir ve okuyucunun bilgiyi kolayca çıkarabilmesi için tablo formatında sunulur.

        Bu kapsamlı bir sistematik derlemedir ve her kanser alt tipinde RE, CA ve RA kullanan ilgili tüm çalışmaları özetleyerek mevcut literatüre katkıda bulunur. İnceleme, deneysel tedavi (RE, CA, RA), kanser türü (histoloji) ve çalışma modeli (in vitro veya in vivo) ile düzenlenerek mevcut literatürün açık, ayrıntılı ve kapsayıcı bir özetini verir. Bu derleme ayrıca, RE, CA ve RA'nın antikanser etkisine dahil olan ana mekanizmaları belirleme çabalarına odaklanmaya yardımcı olmak için gelecekteki araştırmalar için faydalı olacak olan bu çalışmalar tarafından sağlanan mekanik verilere odaklanmaktadır.

        Git: 2. Biberiye Özütünün (RE) Antikanser Etkileri: İn Vitro Çalışmalar

        Kolon kanseri hücre dizilerini kullanan birkaç in vitro çalışma, RE'nin antikanser özellikleri sergilediğini göstermiştir (tablo 1). CaCo-2 kolon kanseri hücrelerinin RE'ye maruz kalması, 30 µg/mL'de (24 saat) koloni oluşumunu büyük ölçüde azalttı [ 15 ]. Yi, et al. (2011), birkaç mutfak ve şifalı bitkinin SW480 kolon kanseri hücreleri üzerindeki anti-tümörojenik etkisini inceledi ve RE'nin hücre büyümesini 31.25 µg/mL (48 saat) ve yaklaşık 71.8 µg/mL IC50 ile hücre büyümesini önemli ölçüde azalttığını buldu. [ 16 ]. Hücre proliferasyonu önemli ölçüde azaldı ve HT-29 ve SW480 hücrelerinde CA'ya (%25-%43) veya toplam polifenol içeriğine (10 uM) standardize edilmiş özütler kullanılarak hücre döngüsü durması indüklendi [ 17 , 18 , 19]. SW620 ve DLD-1 kolon kanseri hücrelerinin hücre büyümesi, 34.6 ug/mL kadar düşük bir IC50 ile 30 µg/mL'de (48 saat) RE tarafından önemli ölçüde inhibe edildi. Ayrıca, RE, kemoterapötik ilaç 5-florourasil (5-FU)'nun proliferasyon ve 5-FU'ya dirençli hücrelere duyarlı hale getirdiği inhibitör etkilerini arttırdı [ 20 ]. tablo 1

        Biberiye Özü'nün (RE) antikanser etkileri. In vitro çalışmalar: kolon kanseri.
        CaCo-2 (Kolorektal adenokarsinom) 0.1–30 µg/mL (3–24 sa) ↓ hücre kolonisi oluşumu. Uzun ve kısa süreli antioksidan etkiler ↓ H 2 O 2 ile indüklenen DNA zinciri kopmaları ve oksidatif hasar.
        ↓ görünür ışık kaynaklı oksidatif hasar
        [ 15 ]
        SW480 (Kolorektal adenokarsinom) 31,25–500 µg/mL (48 saat) ↓ hücre çoğalması.
        250 µg/mL'nin üzerinde sitotoksik.
        IC50~71,8 µg/mL
        [ 16 ]
        HT-29 (Kolorektal adenokarsinom) 10 µM toplam polifenol içeren RE (72 saat) ↓ hücre çoğalması
        ↑ hücre döngüsü durması
        ↑ apoptoz
        [ 17 ]
        HT29 (Kolorektal adenokarsinom) 1,95–62,5 µg/mL (48 sa) 3 RE, %25,9, %36,2, %42,4 CA'ya standartlaştırılmıştır ↓ hücre proliferasyonu
        IC50 > 62,5 µg/mL
        [ 18 ]
        SW480 (Kolorektal adenokarsinom), HT29 (Kolorektal adenokarsinom) 10 µM toplam polifenol içeren RE (48 saat) ↓ hücre proliferasyonu
        SW480 daha hassas
        ↑ hücre döngüsü durdurma
        ↑ antioksidan ve ksenobiyotik etkiler Modüle eder: Nrf2, ER stres genleri, hücre döngüsü, çoğalma genleri [ 19 ]
        SW620 (Kolorektal adenokarsinom), DLD-1 (Kolorektal adenokarsinom) 20–110 µg/mL (24–48 sa) ↓ hücre proliferasyonu
        IC50 36.4 ve 34.6 µg/mL
        5-FU duyarlı ve dirençli hücreler üzerindeki etki
        ↑ apoptoz
        ↓ hücre transformasyonu
        TYMS ve TK1'i modüle eder.
        ↑ PARP bölünmesi
        [ 20 ]
        SW620 (Kolorektal adenokarsinom), DLD-1 (Kolorektal adenokarsinom) 20–120 µg/mL (48 sa) ↓ hücre canlılığı
        IC50 25 µg/mL
        ↑ PARP bölünmesi.
        ↑ GCNT3.
        ↓ miR-15b gen ifadesi
        [ 21 ]
        HT-29 (Kolorektal adenokarsinom), W480 (Kolorektal adenokarsinom), HGUE-C-1 (Kolorektal karsinom) 1,5–100 µg/mL (24–48 sa) ↓ hücre canlılığı [ 22 ]
        HCT116 (Kolorektal karsinom), SW480 (Kolorektal adenokarsinom) 10–100 µg/mL (24 sa, 48 sa, 72 sa) %23 CA'ya standardize edilmiştir ↓ hücre canlılığı
        ↑ apoptoz
        ↑ Nrf2
        ↑ PERK
        ↑ sestrin-2
        ↑ HO-1
        ↑ bölünmüş kasp 3
        [ 23 ]
        HT-29 (Kolorektal adenokarsinom) 30 µg/mL (2–72 sa) ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        ↑ kolesterol birikimi
        ↑ ROS birikimi
        ↑ UPR
        ↑ ER stresi
        ↓ hücre döngüsü genleri
        Değişen kolesterol modüle edici genler
        [ 24 ]
        HT-29 (Kolorektal adenokarsinom) 30–70 µg/mL (24 sa, 48 sa) ↓ hücre proliferasyonu
        IC50 16,2 µg/mL
        ↑ nekroz
        ↑ Nrf2 yolu
        ↑ UPR
        ↑ otofaji
        [ 25 ]
        HT-29 (Kolorektal adenokarsinom) 30–60 µg/mL (6 sa, 24 sa) ↓ hücre çoğalması
        ↑ hücre döngüsü durması
        ↑ Ortamda H 2 O 2
        ↑ ROS seviyeleri
        ↑ HO-1 ve CHOP ifadesi
        [ 26 ]
        Ayrı bir pencerede aç
        H202 ( hidrojen peroksit), 5 -FU (florourasil), TYMS (timidilat sentaz), TK1 (timidin kinaz 1), PARP (poli ADP riboz polimeraz), GCNT3 (glukozaminil ( N - asetil) transferaz 3), miR -15b (mikroRNA-15b). GI50 (%50 büyüme inhibisyonu), TGI (toplam büyüme inhibisyonu), Nrf2 (nükleer faktör eritroid 2-ilişkili faktör 2), casp (kaspaz), UPR (katlanmamış protein yanıtı), ER (endoplazmik retikulum), HO-1 (heme) oksijenaz protein-1), CHOP (C/EBP homolog proteini).

        SW620 ve DLD-1 kolon kanseri hücrelerinde RE, 20 µg/mL kadar düşük konsantrasyonlarda ve yaklaşık 25 µg/mL (48 saat) civarında bir IC50'de önemli inhibisyonla sonuçlanan doza bağlı olarak hücre canlılığını inhibe etti. Bu çalışmada, artan seviyelerde karnosol (CN: %1–3,8 w / w ) ve CA ( %10–30 w / w ) içeren 5 farklı RE kullanılmıştır. w) içeren 5 farklı RE kullanıldı . Hücre canlılığının inhibisyonu, artan CA içeriği ile ilişkilendirildi. Ayrıca, tek başına CA (RE'de bulunan dozlarda) hücre canlılığını azalttı ve bu etki, CN eklenmesiyle (RE'de bulunan dozlarda) güçlendirildi. Bununla birlikte, RE kullanılarak görülen inhibisyon, tek başına veya kombinasyon halinde CA veya CN ile görülen yanıttan daha büyüktü ve bu, RE'de bulunan CA ve CN dışındaki kimyasalların da antikanser etkilerine katkıda bulunduğunu düşündürdü [21 ]. Benzer şekilde RE, karşılaştırılabilir dozlarda (1.5–100 µg/mL; 48 saat) HT29, SW480 ve HGUE-C-1 kolon hücrelerinde hücre canlılığını inhibe etti ve yazarlar, CA ve diğer polifenolleri içeren RE'nin bireysel fraksiyonlarının güçlü olmasına rağmen, kadar güçlü değildi . 22]. HCT116 ve SW480 hücreleri kullanılarak, %23 CA'ya (24-72 saat) standardize edilmiş 10–100 µg/mL RE, hücre canlılığını inhibe etti ve apoptozu indükledi [ 23 ]. Valdes, et al. HT-29 kolon hücrelerini kullanarak, 30-60 µg/mL RE'nin (24-72 saat) hücre proliferasyonunu (IC50 16.2 µg/mL) inhibe ettiğini göstermiştir. Ayrıca RE, hücre döngüsü durması, nekroz, kolesterol birikimi ve ROS birikimini indükledi [ 24 , 25 , 26]. Bu çalışmalar, 20-100 µg/mL aralığında nispeten düşük konsantrasyonlarda hücre büyümesini ve canlılığını sürekli olarak inhibe edebilen, kolon kanseri hücrelerinde bir antikanser ajan olarak RE'nin rolüne dair kanıt sağlar.

        Sıçan RINm5F insülinoma hücrelerinde RE, 25 µg/mL'de (24 saat) hücre proliferasyonunu, 12 µg/mL'de (24 saat) canlılığı ve 25 µg/mL'de (24 saat) artan apoptozu önemli ölçüde inhibe etti [ 27 ] (Tablo 2). Pankreas kanseri hücrelerinin PANC-1 ve MIA-PaCa-2'nin artan konsantrasyonlarda CN (%1-%3,8 w / w ) ve CA ( %10-30% w / w ) içeren RE'ye maruz kalması , hücre canlılığının önemli ölçüde inhibisyonu ile sonuçlanmıştır. sırasıyla 50 µg/mL (48 saat) ve 30 µg/mL (48 saat) IC50 ile. %25.66 w / w CA (alt-maks) içeren RE, PANC-1 hücrelerinde diğer RE'lere kıyasla maksimum inhibisyona neden oldu ve 40 µg/mL'de (48 saat) hücre canlılığını yaklaşık %60'a önemli ölçüde inhibe etti [ 21 ]. Tablo 2

        Biberiye Özü'nün (RE) antikanser etkileri. In vitro çalışmalar: pankreas ve meme kanseri.
        RINm5F (İnsülinoma) 12–100 µg/mL (24–48 sa) ↓ hücre çoğalması
        ↓ hücre canlılığı
        ↑ apoptoz
        ↑ nitrat birikimi.
        ↑ TNFa üretimi.
        [ 27 ]
        MIA-PaCa-2 (Pankreas karsinomu), PANC-1 (Pankreas karsinomu) 20–120 µg/mL (48 sa) ↓ hücre canlılığı ↑ PARP-bölünme [ 21 ]
        MCF-7 ( ER+ ) (Meme adenokarsinomu) 40 mg RE toz filtresi (sigaraya takılı) (2 saat) ↓ BP seviyeleri ve ilişkili DNA eklenti oluşumu. [ 28 ]
        MCF-7 ( ER+ ) (Meme adenokarsinomu), MDA-MB-468 (Meme adenokarsinomu) %0,1–%20 (5–120 saat) IC50 ~90 µg/mL ve 26.8 µg/mL [ 29 ]
        MCF-7 ( ER+ ) (Meme adenokarsinomu), MDA-MB-231 (Meme adenokarsinomu) 6,25–50 µg/mL (48 saat) ↓ hücre canlılığı IC50 ~20.42 µg/mL [ 30 ]
        MCF-7 (Meme adenokarsinomu) 1–250 µg/mL (48 saat) ↓ hücre proliferasyonu IC50 187 µg/mL [ 31 ]
        MCF-7 (Meme adenokarsinomu) 1,95–62,5 µg/mL (48 saat) %25,9, %36,2, %42,4 CA'ya standartlaştırılmış 3 RE ↓ hücre proliferasyonu IC50 9,95–13,89 µg/mL [ 18 ]
        SK-BR-3 ( HER2+ ) (Meme adenokarsinomu), UACC-812 ( HER2+ ) (Meme duktal karsinomu), T-47D ( ER+ ) (Meme duktal karsinomu), MCF-7 ( ER+ ) (Meme adenokarsinomu), MDA- MB-231 (Meme adenokarsinomu) 10-120 µg/mL (48 sa) ↓ hücre canlılığı Kemoterapötiklerin gelişmiş etkisi
        ↑ apoptoz
        ↓ hücre transformasyonu
        ↑ FOS seviyeleri
        ↑ PARP bölünmesi
        ↓ HER2
        ↓ ERBB2
        ↓ ERα reseptörü.
        [ 32 ]
        Ayrı bir pencerede aç
        TNFa (tümör nekroz faktörü), PARP (poli ADP riboz polimeraz), BP (benzopiren), Fos (FBJ murin osteojenik sarkom virüsü), HER2 (insan epidermal büyüme faktörü reseptörü 2), ERBB2 (HER2/neu geni), ERa (östrojen) reseptör a).

        Meme kanseri, tümörlerin kemoterapötik ajanlara duyarlılığına göre üç alt tipte sınıflandırılabilir. Alt tipler (i) ERa'yı eksprese eden ve dolayısıyla östrojenlere yanıt veren östrojen reseptörü pozitif (ER+); (ii) HER2'yi aşırı ifade eden ve ER+ veya ER− olabilen insan epidermal büyüme faktörü reseptörü 2 pozitif (HER2+); (iii) ERα, progesteron reseptörü ve HER2 ekspresyonundan yoksun üçlü negatif (TN). Bir çalışmada, MCF-7 (ER+) meme kanseri hücreleri ve filtreye 40 mg RE eklenmiş veya eklenmemiş bir sigaradan toplanan bir sigara dumanı çözeltisi (PBS içinde) kullanılmıştır. Bu deneyde kullanılan kontrol, 12-18 saat boyunca 2.5 uM benzopiren ile uyarılan ve 1:19 v // a maruz bırakılan hücrelerdi. v'ye maruz bırakılan hücrelerdi.RE filtresi olmadan 2 saat sigara dumanı solüsyonu. Filtrede RE'nin varlığı, önemli ölçüde azaltılmış benzopiren seviyelerine ve ilişkili DNA eklenti oluşumuna yol açar [ 28 ] (Tablo 2).

        RE, meme kanseri hücrelerinde hücre proliferasyonunu MCF-7 (ER+) ve MDA-MB-468 (TN) hücre hatlarında sırasıyla 90 µg/mL ve 26.8 µg/mL IC50 ile inhibe etti [ 29 ] (Tablo 2). Benzer bir çalışmada, MDA-MB-231 (TN) ve MCF-7 (ER+) meme kanseri hücrelerinde ve MCF-7 hücrelerinde hücre canlılığının 6.25–50 µg/mL (48 saat) RE ile doza bağlı inhibisyonu görülmüştür. ~24.02 µg/mL'lik bir IC50'ye sahipti. Biberiye ekstraktının hazırlanması için kullanılan farklı ekstraksiyon yöntemlerine atfedilebilecek rapor edilen IC50 değerlerinde görülen bir tutarsızlık vardır; süperkritik CO 2 [ 30 ] ve etanol ekstraksiyonu [ 29 ]. Ayrıca, 2 ek çalışmada MCF-7 hücreleri kullanılmış ve her ikisinin de hücre proliferasyonunu inhibe ettiği bulunurken, IC50 değerleri 187 µg/mL [ 31 ] ile 9,95-13,89 µg/mL arasında büyük ölçüde değişmiştir (RE, %25-43 olarak standartlaştırılmıştır). % CA) [ 18]. Yukarıda bahsedilen çalışmalarla uyumlu olarak, daha yüksek bir IC50 değeri ile sonuçlanan RE, alkol bazlı metanol ekstraksiyonundan elde edilmiştir [ 31 ].

        1-120 µg/mL'de (48 saat) RE'nin etkileri, üç meme kanseri alt tipinin tamamında, ER+, HER2+ ve TN'de araştırıldı. RE, meme kanseri hücrelerinin tüm alt tiplerinde hücre canlılığının doza bağlı inhibisyonuna neden olmuştur. Ayrıca RE, monoklonal antikor (mAb) trastuzumabın ve meme kanseri tedavisinde kullanılan kemoterapötik ilaçlar tamoksifen ve paklitakselin etkinliğini arttırdı [ 32 ]. Birlikte ele alındığında, bu çalışmalar RE'nin pankreas ve meme kanseri hücre canlılığını ve proliferasyonunu inhibe etme ve 10-100 µg/mL aralığındaki konsantrasyonlarda apoptozu indükleme rolü olduğunu öne sürer.

        Biberiye özü (6.25–50 µg/mL; 48 saat) DU145 ve PC3 prostat kanseri hücrelerinin canlılığını inhibe etti [ 30 ] (Tablo 3). Bu verilerle uyumlu olarak, RE ile LNCaP ve 22RV1 prostat kanseri hücre proliferasyonu ve canlılığının önemli inhibisyonu ve apoptoz indüksiyonu görüldü (%40 CA'ya standardize edilmiş 50 µg/mL; 24-48 saat) [ 33 ]. RE, prostat kanserinin göstergesi olan hücre kültürü ortamında ölçülen gelişmiş prostat spesifik antijen (PSA) seviyeleriyle mücadele edebildi ve seviyeleri kontrol grubunda görülenin beşte birinden daha azına kadar engelledi. Buna uygun olarak, PSA'nın bağlandığı androjen reseptör seviyeleri, 50 µg/mL RE [ 33 ] kadar önemli ölçüde azalmıştır. Hem androjene duyarlı hem de duyarsız hücre dizileri üzerindeki inhibitör etkiler önemlidir ve farklı prostat kanseri alt tiplerinde potansiyel kemoterapötik etkileri düşündürür. Tablo 3

        Biberiye Özü'nün (RE) antikanser etkileri. In vitro çalışmalar: prostat, yumurtalık, rahim ağzı ve mesane kanseri.
        DU145 (Prostat adenokarsinomu), PC3 (Prostat adenokarsinomu) 6,25–50 µg/mL (48 saat) ↓ hücre canlılığı IC50 ~8,82 µg/mL [ 30 ]
        LNCaP (Prostat adenokarsinomu), 22RV1 (Prostat karsinomu) 10–50 µg/mL (24–48 sa) RE, %40 CA'ya standardize edilmiştir ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        ↑ apoptoz
        , endoplazmik retikulum stres proteinlerini modüle eder.
        ↑ CHOP
        ↓ PSA üretimi
        ↑ Bax
        ↑ bölünmüş kasp 3
        ↓ androjen reseptörü ifadesi
        [ 33 ]
        5637 (Mesane kanseri) 0–250 µg/mL (48 sa) ↓ hücre proliferasyonu IC50 48,3 µg/mL [ 31 ]
        A2780 (Yumurtalık kanseri), A2780CP70 (sisplatine dirençli) (Yumurtalık kanseri) %0,05–%0,25 (24–48 saat) ↓ hücre proliferasyonu Sisplatine dirençli hücre hatlarının gelişmiş duyarlılığı.
        ↑apoptoz
        ↑ hücre döngüsü durması Apoptotik genlerin ekspresyonunu modüle eder.
        ↓ P-gliko proteini
        ↑ sitokrom c geni
        ↑ hsp70 geni
        [ 34 ]
        HeLa (Servikal adenokarsinom) 1,56–400 µg/mL (72 saat) ↓ hücre proliferasyonu IC50 23,31µg/mL [ 35 ]
        HeLa (Servikal adenokarsinom) 1,95–62,5 µg/mL (48 saat) %25,9, %36,2, %42,4 CA'ya standartlaştırılmış 3 RE ↓ hücre proliferasyonu IC50 10.02–11.32 µg/mL [ 18 ]
        SK-OV3 (Yumurtalık adenokarsinomu), HO-8910 (Yumurtalık kanseri) %0.0625–%1 biberiye esansiyel yağı (48 saat) ↓ hücre canlılığı
        IC50 %0,025 (SK-OV3)
        IC50 %0,076 (HO-8910)
        [ 36 ]
        Ayrı bir pencerede aç
        CHOP (C/EBP homolog protein), PSA (prostat spesifik antijen), Bax (Bcl-2 ile ilişkili X proteini), casp (kaspaz), hsp70 (ısı şoku proteini 70).

        5637 mesane kanseri hücresinin kullanılması Mothana, et al. (2011), RE'nin 48.3 µg/mL'lik bir IC50 (48 saat) ile hücre proliferasyonunu inhibe ettiğini gösterdi [ 31 ] (Tablo 3). A2780 yumurtalık kanseri hücrelerinin %0,08 (0.8 mg/mL; 48 saat) RE içeren ortama maruz kalması, proliferasyonun önemli ölçüde inhibisyonu ve apoptoz indüksiyonu ve hücre döngüsü durması ile sonuçlandı. Sisplatin, kanser tedavisinde sıklıkla kullanılan bir kemoterapötik ajandır, ancak birçok kemoterapötikte olduğu gibi, hastalar sıklıkla tedaviye direnç geliştirir. %0.08'de RE, A2780 ve sisplatine dirençli A2780CP70 hücre hatlarının sisplatin tedavisi ile büyüme inhibisyonuna duyarlılığını artırdı, bu da RE'nin kazanılmış bir direnç geliştiren hastalarda sisplatin veya potansiyel olarak diğer kemoterapötik ilaçlarla kombinasyon halinde kullanılabileceğini düşündürdü [ 34 ] . HeLa rahim ağzı kanseri hücrelerinde RE, 23.31 µg/mL (72 saat) IC50 ile hücre proliferasyonunu inhibe etti [ 35] ve CA'ya standardize edilmiş RE (%25-%43), hücre proliferasyonunu ~10 µg/mL (48 saat) IC50 ile inhibe etti [ 18 ], bu da daha yüksek CA konsantrasyonları içeren standartlaştırılmış ekstraktların daha büyük antikanser etkileri olabileceğini düşündürmektedir. Ayrıca, insan yumurtalık kanseri hücrelerinde SK-OV3 ve HO-8910 biberiye esansiyel yağı (%0.0625-%1), her hücre hattında sırasıyla %0.025 ve %0.076 IC50 ile hücre canlılığını inhibe etti (48 saat) (Tablo 3) [ 36 ]. Bu çalışma, biberiye esansiyel yağının, aynı konsantrasyonlarda tek başına test edildiğinde, tek tek bileşenlerinden (α-pinen, β-pinen, 1,8-sineol) daha güçlü olduğunu kaydetti.

        İnsan karaciğer Hep-3B hücrelerinde, 0–50 µg/mL'de (24–48 saat) RE, doza bağlı olarak hücre canlılığını azalttı [ 30 , 37 ] ve IC50 değeri 22.88 µg/mL [ 30 ] (Tablo 4). Hücre canlılığı Bel-7402 karaciğer hücrelerinde IC50 değeri %0,13 (1.3 mg/mL; 48 saat) [ 36 ] ile biberiye esansiyel yağı ile ve IC50 değeri 42 µg/mL (48 saat) olan RE ile HepG2 karaciğer hücrelerinde inhibe edilmiştir. ) [ 38 ]. İkinci çalışma ayrıca, test edilen 4 farklı ekstrakttan, daha yüksek CA konsantrasyonlarına sahip olanların hücre proliferasyonunun daha güçlü inhibisyonu ile sonuçlandığını buldu [ 38 ]. Akciğer kanseri hücrelerinde RE, NCI-H82 küçük hücreli karsinom hücrelerinin (6,25–50 µg/mL; 48 saat) canlılığını azalttı [ 30 ] ve A549 küçük hücreli olmayan karsinom hücrelerinin proliferasyonunu azalttı (2,5–200 µg/mL) [ 39 ] her hücre hattında sırasıyla bir IC50 veya 24.08 µg/mL ve 15.9 µg/mL ile (Tablo 4). Bir V79 normal hamster akciğer fibroblast hücre hattında RE, 30 µg/mL'de (24 saat) sitotoksik olmuştur [ 15 ]. Normal fibroblastlarda RE'nin sitotoksisitesi, başarılı bir tedavi seçeneği olarak potansiyeli hakkında soruları gündeme getirmektedir, ancak normal dokulardaki sitotoksisite sorununu tam olarak incelemek için daha fazla araştırma gerekmektedir. Tablo 4

        Biberiye Özü'nün (RE) antikanser etkileri. In vitro çalışmalar: karaciğer ve akciğer kanseri.
        Hep-3B (Hepatoselüler karsinom) 0,5–5 µg/mL (24 saat) ↓ hücre canlılığı ↑ TNFa [ 37 ]
        Hep-3B (Hepatoselüler karsinom) 6,25–50 µg/mL (48 saat) ↓ hücre canlılığı IC50 ~22.88 µg/mL [ 30 ]
        Bel-7402 (Hepatoselüler karsinom) %0.0625–%1 biberiye esansiyel yağı (48 saat) ↓ hücre canlılığı IC50 %0,13 [ 36 ]
        HepG2 (Hepatoselüler karsinom) 10-120 µg/mL (48 sa) ↓ hücre canlılığı
        IC50 42 µg/mL
        GI50 20 µg/mL
        [ 38 ]
        NCI-H82 (Akciğer kanseri; SCLC) 6,25–50 µg/mL (48 saat) ↓ hücre canlılığı IC50 ~24.08 [ 30 ]
        V79 (Normal hamster akciğeri) 0.1–30 µg/mL (3–24 sa) 30 µg/mL'de hücreler için sitotoksik (24 saat) Uzun ve kısa süreli antioksidan etkiler ↓ H 2 O 2 ile indüklenen DNA zinciri kopmaları ve oksidatif hasar.
        ↓ görünür ışık kaynaklı oksidatif hasar
        [ 15 ]
        A549 (Akciğer adenokarsinomu) 2,5–200 µg/mL (48–72 sa) ↓ hücre çoğalması
        ↓ hücre hayatta kalması
        ↑ apoptoz IC50 ~15.9
        ↓ p-Akt
        ↓ p-mTOR
        ↓ p-P70S6K
        ↑ PARP bölünmesi
        [ 39 ]
        Ayrı bir pencerede aç
        mTOR (rapamisinin memeli hedefi), PARP (poli(ADP-riboz) polimeraz).

        D vitamini analogları (VDA), miyeloid progenitör hücrelerin çoğalmayan yetişkin hücrelere olgunlaşma kapasitesindeki bir kusuru düzeltmeye çalışmak için akut miyeloid löseminin (AML) klinik farklılaşma terapisinde yaygın olarak kullanılır. Bununla birlikte, farmakolojik olarak ilgili dozların, hiperkalsemi gibi birçok olumsuz olayla sonuçlandığı bulunmuştur ve bu olumsuz olayları önleme girişimleri başarısız olmuştur. 10 µM eşdeğer CA veya tek başına 10 µM CA (96 saat) içeren RE, D vitamini türevlerinin hücre canlılığını ve proliferasyonunu inhibe etme, apoptozu ve hücre döngüsü durmasını indükleme ve WEHI-3BD murin lösemik ve insan HL- farklılaşmasını artırma yeteneğini güçlendirdi. 60 lösemik hücre [ 40 , 41 ] (Tablo 5). İnsan lösemi HL-60 ve K-562 hücre dizilerini ve murin RAW264.7 makrofaj/monosit hücre dizisini inceleyen bir çalışma, %0.14 (1.4 mg/mL) ve %0.25 (2.5 mg/mL) IC50 ile proliferasyonun önemli ölçüde inhibisyonunu bulmuştur. mL) sırasıyla HL-60 ve K-562 hücreleri için. Ek olarak %0,1 (1 mg/mL; 72 saat) RE, HL-60 hücrelerinin farklılaşmasını önemli ölçüde arttırdı [ 29 ]. RE, K-562 lösemi hücrelerinde 50 µg/mL'de (48 saat) canlılığı inhibe etti [ 30 ]. RE'nin benzer etkileri (50 µg/mL; 24 saat), K-562 hücrelerinin proliferasyonunun azalmasına yol açan başkaları tarafından rapor edilmiştir [ 42 ]. Tablo 5

        Biberiye Özü'nün (RE) antikanser etkileri. In vitro çalışmalar: lösemi.
        WEHI-3B D (Murin miyeloid lösemi), HL-60 (Miyeloid lösemi), U937 (Miyeloid lösemi) RE (CA'nın 10 µM eşdeğeri) (48–96 sa) VDA'nın aşağıdaki etkilerini güçlendiren:
        ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        ↑ hücre farklılaşması
        ↑ apoptoz
        ↑ G1 fazı [ 41 ]
        RAW 264.7 (Murin lösemi; makrofaj), HL-60 (Miyeloid lösemi), K-562 (İnsan lösemi) %0,1–%20 (5–120 saat) (1–200 mg/mL) ↓ hücre proliferasyonu IC50 ~18.76 µg/mL ve 33.5 µg/mL
        ↑ hücre farklılaşması
        ↓ LPS ile uyarılan (LS) antioksidan aktivite
        ↓ (LS) NO
        ↑ antioksidan aktivite
        ↔ bazal TNFɑ, IL-1β, iNOS veya COX2
        ↓ (LS) IL-1β ve COX2
        [ 29 ]
        WEHI-3B D (Murin miyeloid lösemi) RE (CA'nın 10 µM eşdeğeri) (48–96 sa) VDA'nın aşağıdaki etkileri güçlendirilmiştir:
        ↑ hücre farklılaşması
        ↓ hücre canlılığı
        ↓ hücre proliferasyonu
        ↓ ROS
        ↑ antioksidan aktivite
        ↑ NADP(H)-kinon redüktaz
        [ 40 ]
        K-562 (İnsan lösemisi) 6,25–50 µg/mL (48 saat) ↓ hücre canlılığı IC50 ~12.50 µg/mL [ 30 ]
        K-562 (İnsan lösemisi), U937 (Miyeloid lösemi) 50 µg/mL (0–96 sa) ↓ hücre çoğalması ↓ AKT1
        ↑ Kb2
        ↔ ERK2
        [ 42 ]
        Ayrı bir pencerede aç
        VDA (D vitamini analoğu), LPS (lipopolisakkarit), NO (nitrik oksit), TNFa (tümör nekroz faktörü α), IL-1β (interlökin 1β), iNOS (uyarılabilir nitrik oksit sentaz), COX2 (siklooksijenaz 2), ROS ( reaktif oksijen türleri), NADP (nikotinamid adenin dinükleotid fosfat), Rb2 (retinoblastoma ile ilgili gen 2).

        Git: 3. Biberiye Özütünün (RE) Antikanser Etkileri: In Vivo Hayvan Çalışmaları

        Sınırlı sayıda çalışma, RE uygulamasının hayvanlarda tümör büyümesi üzerindeki etkilerini in vivo olarak incelemiştir (Tablo 6). 32-35 gün boyunca ad libitum içme suyunda RE (1 mg/mL) uygulaması, SW620 kolon kanseri hücreleri ile ksenograft uygulanmış çıplak farelerde tümör boyutunda önemli bir azalma ile sonuçlanmıştır [ 21 ]. HCT116 kolon kanseri ksenogreftli atimik çıplak farelerin kullanıldığı benzer bir çalışma, zeytinyağında çözülmüş 100 mg/kg/gün RE ile (4 hafta) beslenen hayvanlarda, kontrole kıyasla tedavi edilen hayvanlarda tümör boyutunu önemli ölçüde azaltmıştır [ 23 ]. N-metilnitrosourea ile indüklenen kolon kanserli Sprague Dawley sıçanlarından toplanan serum numunelerinin biyokimyasal analizi, 4 aylık tedaviden sonra hem yüksek (3333.3 mg/kg/gün) hem de düşük (1666,6 mg/kg/gün) doz RE ile önemli antikanser etkileri gösterdi. gen ve protein sinyalleşmesinde önemli değişiklik ve lenfoid hücrelerin toplanması ile [ 43 ]]. 22 gün boyunca zeytinyağında çözündürülmüş RE (100 mg/kg/gün) ile 22RV1 prostat kanseri hücreleri ile ksenograflanmış farelerde tümör hacminde önemli bir azalma görülmüştür [ 33 ]. Tablo 6

        Biberiye Özü'nün (RE) antikanser etkileri. Canlılarda yapılan çalışmalar.
        SW620 kolon ksenograftı (çıplak fareler) 1 mg/mL içme suyunda (32-35 gün) ad libitum ↓ tümör boyutu ↓ plazmada miR-15b [ 21 ]
        HCT116 kolon ksenograftı (atimik çıplak fareler) 100 µL zeytinyağında oral gavaj yoluyla 100 mg/kg/gün (4 hafta) ↓ tümör boyutu ↑ Nrf2 ifadesi
        ↑ sestrin-2 ifadesi
        [ 23 ]
        NMN kaynaklı kolon kanseri (Sprague-Dawley sıçanları) 1666,6 mg/kg/gün (düşük doz) RE veya 3333.3 mg/kg/gün (yüksek doz) RE oral yoldan (4 ay) Her iki RE de karşılaştırılabilir etkiler gösterdi. Submukozada lenfoid hücre agregasyonuna yol açar ↑ cyt C
        ↑ PCDP4
        ↓CEA
        ↓ CCSA-4
        ↓ β-katenin, K-ras, c-myc gen ifadesi
        [ 43 ]
        22RV1 prostat ksenograftı (atimik çıplak fareler) 100 mg/kg/gün zeytinyağında, ağızdan (22 gün) ↓ tümör hacmi (apoptozu indükler) ↓ androjen reseptörü ifadesi
        ↓ PSA
        ↑ CHOP
        [ 33 ]
        DEN kaynaklı karaciğer kanseri (F344 sıçanlar) 100 mg/kg/gün RE intragastrik olarak (5 gün) 4. günde 20 mg/kg DEN ile ip enjekte edildi 3. haftaya kadar normal diyetle beslendi (kısmi hepatektomi yapıldı) ↑ antioksidan aktivite ↓ GST pozitif odakları [ 44 ]
        γ-IR'ye maruz kalan İsviçre fareleri (karaciğer) 6Gy γ-IR (bir kez) ve ardından 1000 mg/kg/gün RE oral yoldan (5 gün) IR kaynaklı mortalitenin gecikmeli başlangıcı
        Zayıflatılmış negatif IR etkileri
        Karaciğer ve kan üzerinde koruyucu etki
        ↓ LPx seviyeleri
        ↑ GSH seviyeleri
        [ 45 ]
        Miyeloid lösemi aşılanmış fareler % 1 RE w/w gıdada ad libitum (29 gün) ↓ tümör hacmi
        ↓ tümör insidansı Güçlendirilmiş VDA yeteneği
        ↓ tümör hacmi
        [ 41 ]
        Miyeloid lösemi aşılanmış fareler %4 w/w gıdada ad libitum (15 hafta) Tek başına RE ↔ medyan hayatta kalma süresi RE+VDA
        ↑ medyan hayatta kalma süresi
        ↓ WBC [ 40 ]
        DMBA kaynaklı cilt kanseri (çıplak fareler) 1000 mg/kg/gün RE ağızdan su içinde veya gavaj yoluyla (15 hafta) ↓ tümör sayısı
        ↓ tümör insidansı
        ↓ tümör yükü
        ↓ tümör verimi
        ↑ gecikme süresi
        ↓ LPx seviyeleri
        ↑ GSH seviyeleri
        [ 46 ]
        DMBA kaynaklı cilt kanseri (çıplak fareler) 500 mg/kg/gün RE ağızdan su içinde veya gavaj yoluyla (15 hafta) ↓ tümör numarası
        ↓ tümör çapı
        ↓ tümör ağırlığı
        ↓ LPx seviyeleri
        ↑ GSH seviyeleri
        [ 47 ]
        Ayrı bir pencerede aç
        miR-15b (microRNA 15b), PSA (prostat spesifik antijen), CHOP (C/EBP homolog protein), VDA (D vitamini analoğu), WBC (beyaz kan hücresi), GST (glutatyon S transferaz), IR (iyonize radyasyon) , LPx (lipid peroksidaz), GSH (glutatyon), DEN (dietilnitrozamin), DMBA (7,12-dimetilbenz(a)antrasen), NMN ( N -metilnitrozoüre), cyt C (sitokrom C), PCDP4 (programlanmış hücre ölüm proteini 4), CEA (karsinoembriyonik antijen), CCSA-4 (kolon kanseri spesifik antijen 4), LPx (lipid peroksidaz), GSH (glutatyon).

        F344 sıçanlarında dietilnitrozamin (DEN) ile indüklenen bir karaciğer kanseri modelinde, 100 mg/kg/gün (5 gün) RE, 4. günde intraperitoneal (ip) DEN enjeksiyonu ile intragastrik olarak uygulandı. Bu noktadan itibaren, sıçanlar beslendi. Kısmi hepatektomi yapılana kadar 3 hafta boyunca normal bir diyet. Karaciğer dokusunun incelenmesi, RE'nin bazı koruyucu antioksidan etkiler gösterebileceğini öne sürdü [ 44 ]. Buna uygun olarak, karaciğerlerinde 6 Grays (Gy) iyonlaştırıcı radyasyona (IR) maruz kalan İsviçre farelerinin bir kez kullanılması, ardından 5 gün boyunca günlük 1000 mg/kg RE ile oral yolla tedavi edilmesi, RE tarafından koruyucu, antioksidan aktivite önerdi. IR'ye maruz kalan ve RE ile beslenen farelerin karaciğerlerinde, RE ile beslenmeyen IR'ye maruz kalan farelere kıyasla, IR kaynaklı mortalitenin gecikmeli bir başlangıcı ve glikojen ve protein seviyelerinde azaltılmış artışlar görülmüştür [ 45 ].]. Bununla birlikte, kullanılan yüksek konsantrasyon (1000 mg/kg) nedeniyle [ 45 ] ve diğer çalışmalarda güçlü antikanser etkileri gösterdiği tespit edilenden en az 10 kat daha fazla olduğundan dikkatli olunmalıdır . Birlikte ele alındığında, bu çalışmalar, sağlıklı dokular üzerinde koruyucu, antioksidan etkiler uygulayarak RE'nin kimyasal veya IR kaynaklı karsinojenezi inhibe etme rolü olduğunu düşündürmektedir. Böylece RE, radyasyon tedavisi sırasında sağlıklı dokuya fayda sağlayacak radyo koruyucu etkiler gösterebilir.

        WEHI-3BD miyeloid lösemi ksenograflı farelerde , ad libitumlarında (29 gün) % 1 w / w RE ile beslenmiş farelerde, araştırmacılar hem tümör hacminde hem de insidansında önemli bir düşüş kaydetti. Ayrıca RE, Vitamin D analogları (VDA) ile birleştirildiğinde ilave bir etki göstermiştir [ 41 ]. VDA'lar ile birlikte 15 haftaya kadar RE (gıdada ağırlık / ağırlık %4) uygulanan WEHI-3BD ksenograflı farelerde , medyan hayatta kalma süresi önemli ölçüde arttı ve beyaz kan hücresi sayısı, sağlıklı kontrol grubunda görülenlerle karşılaştırılabilir seviyelere düştü. fareler [ 40 ].

        7,12-dimetilbenz(a)antrasen (DMBA) ile indüklenen cilt kanseri çıplak fare modeli kullanılarak, su içinde ağızdan uygulanan RE (500 veya 1000 mg/kg/gün; 15 hafta) tümör sayısında, çapında önemli bir azalma ile sonuçlandı. , tümör insidansı ve yükünde ağırlık ve azalma ve sadece DMBA ile tedavi edilen kontrol farelerine kıyasla gecikme süresinde bir artış [ 46 , 47 ]. DMBA'nın ilk uygulamasından 7 gün önce RE uygulanan bir grup fare, yalnızca DMBA ile tedavi edilen farelere kıyasla tümör büyümesinde %50'lik bir azalma gösterdi, bu da güçlü kemo koruyucu etkiler olduğunu düşündürdü [ 47 ].

        Git: 4. Biberiye Ekstraktının (RE) Antikanser Etkilerinin Mekanizmaları: İn Vitro Çalışmalar

        Birçok çalışma, kolonda [ 15 , 16 , 17 , 18 , 19 , 20 , 24 , 25 , 26 ], pankreasta [ 27 ], memede [ 18 , 29 , 31 ] RE'nin anti-proliferatif ve koloni oluşturma yeteneklerini in vitro olarak incelemiştir. , 32 ], prostat [ 33 ], servikal [ 18 , 35 ], mesane [ 31 ], yumurtalık [ 34 ], akciğer [ 39 ] ve lösemi [ 29 , 40 ,41 , 42 ] hücre hatları, ancak altta yatan mekanizma ile ilgili çok az şey bilinmektedir. RE'nin, bir lösemik hücre hattında [ 42 ] , PI3K/Akt hayatta kalma sinyal yolunda yer alan bir protein olan AKT1 mRNA ve protein ekspresyonu üzerinde inhibitör bir etkiye sahip olduğu gösterildi, ancak Akt aktivitesinin hiçbir ölçüsünden söz edilmedi. Bu hücrelerde hücre proliferasyonu ve farklılaşmasında yer alan ERK2 protein seviyeleri üzerinde herhangi bir etki görülmedi. Hücre döngüsü durması, hücreleri çoğaltarak daha fazla bölünmeyi önler ve RE'nin bir dizi kanser hücre hattında hücre döngüsü durmasını indüklediği gösterilmiştir [ 17 , 19 , 24 , 25 , 33 , 34 , 41] ve hücre bölünmesine girişi düzenleyen retinoblastoma ile ilişkili gen 2'yi (Rb2) [ 42 ] arttırır. Son zamanlarda, Moore ve ark. (2016), hücre proliferasyonu ve hayatta kalmasında önemli bir azalma ile ilişkili olan Akt/mTOR/p70S6K sinyal yolunun aktivasyonunu RE'nin inhibe ettiğini bulmuştur [ 39 ].

        Çeşitli kanser hücre hatlarının canlılığının, birçok çalışmanın gelişmiş apoptoz ve hücre ölümüne atfedilen RE ile tedavi ile önemli ölçüde inhibe edildiği gösterilmiştir. Artmış apoptozun yerleşik bir göstergesi olan artmış poli ADP riboz polimeraz (PARP) bölünmesi, RE ile tedavileri takiben kolon [ 20 , 21 ], pankreas [ 21 ], meme [ 32 ] ve akciğer [ 39 ] kanser hücre hatlarında görüldü. . Alternatif olarak, RE pankreatik [ 27 ] ve karaciğerde [ 37 artırdı, bu da gelişmiş hücre ölümü yeteneklerinin ve nitrik oksitin neden olduğu apoptozun göstergesidir. Yumurtalık kanseri hücrelerinde [34 nitrat birikimini (yani artan nitrik oksit üretimini) ve TNFa üretimini arttırdı. ] gelişmiş apoptoz, elektron taşıma zincirinde yer alan mitokondriyal regüle apoptoz proteinleri sitokrom c'nin ve protein katlanmasında ve hücreyi ısı stresi ve toksik kimyasallardan koruyan ısı şoku proteini 70'in (hsp70) artan gen ekspresyonu ile ilişkilendirilmiştir. . RE ile apoptozun diğer mekanizmaları arasında proapoptotik Bax ve bölünmüş kaspaz 3'ün artmış protein ekspresyonu [ 23 , 33 ], bağlayıcı immünoglobulin proteinin (BiP) ve CCAAT/-arttırıcı bağlayıcı protein homolog protein (CHOP) proteinlerinin artmış ekspresyonu yer alır. endoplazmik retiküler stresi [ 25 , 33 ] ve katlanmamış protein tepkisini [ 24 , 25 , 26 ] indükler, 33 ] prostat ve kolon kanseri hücrelerinde. İlginç bir şekilde, normal prostat epitel hücrelerinde RE tedavisi, endoplazmik retiküler stresle ilişkili protein PRKR-benzeri endoplazmik retikulum kinazda (PERK) bir azalma ile sonuçlanmıştır; bu, RE'nin prostat kanseri hücrelerinde seçici olarak endoplazmik retiküler stresi indüklediğini, ancak normal prostat hücrelerini koruduğunu düşündürür [ 33 ]. Benzer şekilde meme kanseri hücrelerinde [ 32] RE, ER+ alt tipinde östrojen reseptörü α (ERa) ekspresyonunu ve HER2+ alt tipinde insan epidermal büyüme faktörü reseptörü 2 (HER2) ekspresyonunu azalttı ve azalmış reseptör ekspresyonunun bu hücre alt tiplerinde artmış apoptoz ile korele olduğu öne sürüldü. Buna uygun olarak, ER+ ve HER2+ hücre dizilerinde onkojenik bir transkripsiyon faktörü olan artan Fos seviyeleri tespit edildi ve bu olayın apoptozdan önce geldiği ve bu hücrelerde görülen PARP bölünmesine karşılık geldiği düşünülüyor. RE, üçlü negatif (TN) meme kanseri hücrelerinde antikanser etkileri indükleyebilmesine rağmen, mekanizması henüz aydınlatılamamıştır [ 32 ].

        Apoptozun endoplazmik retiküler stres ile indüklenmesi, kolon kanseri hücrelerinde [ 19 , 23 , 24 , 26 ] yapılan birkaç çalışmada bulunmuştur ve nükleer faktör eritroid 2 ile ilişkili faktör 2'nin (Nrf2) çekirdeğe translokasyonunu ve indüksiyonunu içerdiği gösterilmiştir. p38 MAPK ve PERK aktivitesi. Nrf2/antioksidan yanıt elemanı (ARE) sinyal yolunun, ROS ve karsinojenleri nötralize ederek hücreleri karsinojeneze karşı koruduğu ve kanser gelişimini azalttığı kabul edilmiştir ve sestrin-2 ve heme oksijenaz-1 (HO-1) dahil olmak üzere bu yolun üyeleri, kolon kanseri hücrelerinde RE tarafından yukarı regüle edilir [ 23 , 25 ]]. Genel olarak, mevcut çalışmaların çoğu RE'nin antikanser etkilerinin büyük ölçüde apoptoz indüksiyonuna bağlı olabileceğini göstermektedir.

        Antioksidanlar, zararlı serbest radikalleri temizleyen, hücreleri oksidatif DNA hasarından ve potansiyel olarak ölümden koruyan moleküllerdir. RE'nin kolon [ 15 ], meme [ 28 ] ve lösemi [ 29 , 40 ] hücre dizilerinde antioksidan etkiler gösterdiği gösterilmiştir . RE ile ön işleme tabi tutulan kolon kanseri hücreleri, ardından genellikle hücre kültüründe oksidatif DNA hasarını indüklemek için kullanılan hidrojen peroksit ile tedavi, yalnızca hidrojen peroksit ile tedavi edilen kontrol hücrelerine kıyasla daha düşük DNA çift sarmal kopmaları ve oksidatif hasar gösterdi. Benzer şekilde RE, bu hücrelerde metilen mavisi (pürinleri oksitler) tarafından indüklenen oksidatif hasarı azalttı [ 15 ]]. RE tedavisi, artan antioksidan seviyeleri ve NAPD(H)-kinon redüktaz (indirgenmiş bir molekülden oksitlenmiş bir moleküle elektron transferinde rol oynayan oksidoredüktaz) ile sonuçlandı, bu da reaktif oksijen türleri (ROS) seviyelerini azalttı ve lipopolisakkariti (LPS) inhibe etti- lösemi hücre dizilerinde serbest radikal nitrik oksit (NO) üretimini uyardı [ 29 , 40 ]. Bir in vitro sigara içimi modelinde, RE içeren sigara filtresinin kullanımı, meme kanseri hücrelerinde benzopiren (kanserojen) seviyelerini ve ilişkili DNA eklenti oluşumunu önemli ölçüde azaltmıştır. 28 ].]. RE tedavisinin kanser hücrelerinde ROS seviyelerini inhibe etme etkisi, kanser hücreleri için bir antikanser etkisi değil, faydalı olarak görülebilir. Geleneksel olarak kanser tedavileri, kanser hücrelerinin apoptozu/öldürülmesi ile sonuçlanmalıdır. RE tedavisi tarafından uygulanan antioksidan özellikler, kanserin başlama ve ilerleme aşamalarını hedefleyebilecek bir önleyici strateji olarak RE için bir potansiyel olduğunu gösterir. Antioksidanlar, hasarlı DNA'yı normale döndürmek ve hücreyi daha fazla hasardan korumak için çalışır, böylece bir kanser hücresine olası mutasyonu ve ardından tümör oluşumunu önler.

        Yukarıda belirtilen antiproliferatif, apoptotik ve antioksidan mekanizmalara ek olarak, bazı kanıtlar RE'nin (i) interlökin-1 (IL-1) ve siklooksijenaz 2 (COX2) moleküllerinin inhibisyonu yoluyla anti-inflamatuar etkiler [ 29 ] uygulayabileceğini; (ii) P-glikoprotein seviyelerini (ilaç direncinde rol oynar) inhibe ederek kazanılmış ilaç direncinin tersine çevrilmesine yardımcı olur [ 34 ]; ve (iii) çeşitli makromoleküllerde glikozidik bağlantılar oluşturan glikosiltransferaz (GCNT3) gibi metabolik ilişkili genleri [ 21 ] ve bunun potansiyel epigenetik düzenleyicisi microRNA-15b'yi değiştirir. Otofajinin indüklenmesi [ 26 ] ve kolesterol metabolizmasındaki değişiklikler [ 24 ] ayrıca kolon kanseri hücrelerinde RE mekanizmaları olabilir.

        Git: 5. Biberiye Özütünün (RE) Antikanser Etkilerinin Mekanizmaları: In Vivo Hayvan Çalışmaları

        RE'nin in vivo mekanizmasına ilişkin sınırlı kanıt mevcuttur, ancak az sayıda çalışma, RE'nin antikanser etkileri için potansiyel antioksidan etkileri ve serum biyobelirteçlerini listeler. Bir antioksidan olan glutatyonda (GSH) artışlar ve serbest radikal üretimi ve hücre hasarı ile sonuçlanan bir oksitleyici ajan olan lipid peroksidazda (LPx) azalmalar, IR ile indüklenen fare karaciğeri [ 45 ] ve DMBA ile indüklenen fare cilt kanserinde kaydedilmiştir. [ 46 , 47 ] RE ile tedavi edilen modeller. Benzer şekilde RE, GSH'nin azalmasından kaynaklanan oksidatif hasarla ilişkili olan glutatyon-S transferaz (GST) pozitif odaklarını azalttı [ 40 ], ancak, sıçan DEN ile indüklenen bir karaciğer kanseri modelinde, sonuçlar anlamlı değildi ve dikkatle alınmalıdır. [ 44 ].

        Prostat kanseri hücreleri ile ksenograflanmış ve diyetlerinde RE ile beslenmiş farelerden alınan serum numuneleri, prostat spesifik antijen (PSA) seviyelerinde bir düşüş gösterdi (yüksek seviyeler prostat kanserini düşündürür) ve doku numunelerinin incelenmesi, azalmış androjen reseptörü ve CHOP ekspresyonu gösterdi, endoplazmik retiküler stres ile ilişkili apoptoz indüksiyonunun göstergesidir [ 33 ]. Benzer şekilde, HCT116 kolon kanseri ksenograflı fareler, endoplazmik retiküler stresin göstergesi olan ve artmış apoptoza yol açabilen Nrf2 ve Sestrin-2 ekspresyonunda artış gösterdi [ 23 ]]. Kolon kanseri ksenograflı farelerde RE uygulamasından sonra mikroRNA-15b (miR-15b) plazma seviyelerinde önemli bir azalma, dolaşımdaki miR-15b seviyelerinin RE'nin in vivo antitümör etkilerini izlemek için minimal invaziv bir yöntem olarak işlev görebileceğini öne sürdü [ 21 ]. Ayrıca, RE ile beslenen N -metilnitrosourea (NMN) ile indüklenen kolon kanserine sahip sıçanlar, sitokrom c, programlanmış hücre ölümü proteini 4 (PCDP4), karsinoembriyonik antijen (CEA) ve kolon kanserine özgü antijen dahil hücre ölümünü modüle eden proteinlerde önemli değişiklikler gösterdi. 4 (CCSA-4) [ 43]. RE'nin kemoterapötiklerde potansiyel kullanımını desteklemek için yeterli kanıt mevcuttur, ancak RE tarafından görülen antikanser etkilerinin ekstre içindeki tek tek polifenollere mi atfedilebilir yoksa ekstre içindeki tüm bileşenlerin kombinasyonuna mı dayandığı hala iyi anlaşılmamıştır. Bu derlemenin bir sonraki bölümü, RE'nin iki ana polifenolünün, CA ve RA'nın rolünü ve bunların RE'nin antikanser etkilerine potansiyel katkısını araştırıyor.

        Git: 6. Karnosik Asidin (CA) Antikanser Etkileri: İn Vitro Çalışmalar

        Farklı kolon kanseri hücrelerinin CA ile tedavisi, 1 ila 400 µM arasında değişen ve 20-90 µM aralığında IC50 değerlerine sahip olan konsantrasyonlar kullanılarak hücre canlılığının önemli ölçüde inhibisyonu ile sonuçlandı (Tablo 7). Ek olarak, CA Caco-2 hücrelerinde apoptozu ve hücre döngüsü durmasını indükledi [ 48 , 49 ] ve hücre döngüsü düzenleyicisi siklin A'nın aktivitesini inhibe ederek Caco-2, HT-29 ve LoVo hücrelerinde hücre yapışmasını ve göçünü engelledi [ 49 ] [ 48 ] ve MMP-9, uPA ve COX-2 aktivitesini inhibe ederek, hücre adhezyonu ve migrasyon özellikleri ile ilişkili [ 49 ]. Benzer şekilde, onkojenik olan hiperaktif β-kateninli SW480 kolorektal kanser hücrelerinde, CA, proteasomal degradasyon için β-katenin'i hedeflemiştir ve bu, CA'nın küçük moleküllü bir onkojenik β-katenin inhibitörü olarak kullanılma potansiyeli olduğunu düşündürmektedir [ 50 ].]. SLW620 ve DLD-1 hücrelerinde CA, hücre canlılığını inhibe etti ve bu, miR-15b'nin aşağı regülasyonu ve metabolik ile ilgili genlerin regülasyonu ile bağlantılı olan GCNT3 aktivitesinin artmasıyla ilişkilendirildi [ 21 ]. Ayrıca, HT-29 kolon hücrelerinde CA, hücre proliferasyonunu ve gelişmiş hücre döngüsü durmasını inhibe etti; bu, bir dizi taşıma ve biyosentez geninin değiştirilmiş ifadesi ve detoksifiye edici enzimlerin ve metabolitlerin değiştirilmiş aktivitesi ile ilişkilendirildi. Önemli bir antioksidan olan GSH seviyeleri arttırılmış ve yüksek dozlarda toksik olan N -asetilputresin seviyeleri azalmıştır [ 51 ].]. 3T3-L1 adipositleri ile birlikte kültürlenen HT-29 hücrelerinde, CA, trigliserit birikimini inhibe ederek ve Ob-R reseptörünün ekspresyonunu aşağı regüle ederek adipositlerin kolon kanseri hücreleri üzerindeki olumsuz etkilerini hafifletti [ 52 ]. Bu hücrelerde CA, hücre hayatta kalma düzenleyicileri Akt ve Bcl-xL'nin fosforilasyonunu azaltarak ve Bax ekspresyonunu artırarak hücre canlılığını da inhibe etti. Ayrıca, hücre döngüsü durması, siklin D1 ve CDK4'ün inhibisyonu ile indüklendi [ 52 ].]. Benzer şekilde, esas olarak CA'dan (%98.7 saf) oluştuğu bulunan biberiye ekstraktının bir kısmı HT-29, SW480 ve HGUE-C-1 kolon kanseri hücreleri üzerinde test edildi ve hücre canlılığını önemli ölçüde inhibe etti. Test edilen RE'nin birkaç farklı fraksiyonu arasında, CA içeren fraksiyonun en aktif olanlar arasında olduğu bulundu ve ekstraktın birçok bileşeni arasındaki sinerjinin biberiyenin antikanser etkilerinde rol oynadığı öne sürüldü [ 22 ]. HT-29 hücrelerinde hücre proliferasyonunun inhibisyonu ve CA tarafından artan hücre döngüsü durmasının, katlanmamış protein yanıtı tarafından düzenlendiği ve endoplazmik retiküler stres tarafından tetiklendiği bulundu. 24 ].] apoptoza ve dolayısıyla kanserli hücrelerin yok edilmesine yol açabilir. CA ile tedavi edilen kanser hücrelerinde artan kolesterol ve ROS birikiminin de görülen proliferasyon inhibisyonuna katkıda bulunduğu gösterilmiştir [ 24 ]. Benzer şekilde, HT-29, HCT116 ve SW480 kolon hücrelerinde p53, Bax, kaspazlar ve PARP dahil pro-apoptotik belirteçlerin aktivitesi artmış ve anti-apoptotik belirteçler MDM2, Bcl-2 ve Bcl-xL azalmıştır [ 53 ]. ROS ve H 2 O 2 seviyeleri hücre ortamında in vitro olarak artırıldı [ 25 , 53] hücresel stresi ve dolayısıyla kanser hücresi ölümünü tetikleyebilen CA tarafından. Sinyal molekülleri STAT3 ve survivin, hücre sağkalımını düzenlemede kilit bir rol oynar ve CA, kolon kanseri hücrelerinde bu moleküllerin aktivitesini inhibe eder [ 53 ]. Bu çalışmalar, nispeten düşük dozlarda (1-100 µM) CA'nın, temel sinyal moleküllerinin ekspresyonunu modüle ederek ve hücre metabolizmasını değiştirerek kolon kanseri hücre büyümesini ve hayatta kalmasını engelleyebildiğine dair güçlü kanıtlar sağlar. Tablo 7

        Karnosik Asit'in (CA) antikanser etkileri. In vitro çalışmalar: kolon kanseri.
        Caco-2 (Kolorektal adenokarsinom) 1–50 µM CA (48 saat) ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        ↑ hücre iki katına çıkma süresi
        IC50 23 µM
        ↓ siklin A [ 48 ]
        Caco-2 (Kolorektal adenokarsinom), HT-29 (Kolorektal adenokarsinom), LoVo (Kolorektal adenokarsinom) 1-388 µM CA (48 saat) ↑ apoptoz
        ↓ hücre yapışması ve göçü
        IC50 26.4–92,1 µM (Caco2'de yüksek)
        ↓ MMP-9 ve uPA aktivitesi, COX-2 ifadesi [ 49 ]
        SW480 (Kolorektal adenokarsinom) 25–100 µM CA (6 saat) proteasomal degradasyon için aktive edilmiş β-katenin'i hedefler ve onkojenik β-katenin'i destabilize eder ↓ BCL9-β-katenin etkileşimi [ 50 ]
        SW620 (Kolorektal adenokarsinom), DLD-1 (Kolorektal adenokarsinom) 2–18 µg/mL (6,02–54,15 µM) CA (48 sa) ↓ hücre canlılığı ↑ GCNT3.
        ↓ miR-15b gen ifadesi.
        [ 21 ]
        HT-29 (Kolorektal adenokarsinom) 5-35 µg/mL (15-105 µM) CA (24-72 sa) ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        Detoksifiye edici enzimlerin ve metabolitlerin aktivitesini değiştirir
        ↑ GSH seviyeleri
        Taşıma ve biyosentez genlerinin değişmiş ifadesi
        ↓ N-asetilputresin
        [ 51 ]
        HT-29 (Kolorektal adenokarsinom) 1–10 µM CA (24–48 saat) ↓ hücre canlılığı
        ↑ hücre döngüsü durması
        ↓ 3T3-L1 adipositlerin trigliserit birikimi
        ↓ p-Akt, siklin D1, CDK4, Bcl-xL
        ↑ Bax ifadesi, Ob-R ifadesi
        [ 52 ]
        HT-29 (Kolorektal adenokarsinom), SW480 (Kolorektal adenokarsinom), HGUE-C-1 (Kolorektal karsinom) 30–60 µg/mL (24–48 sa) RE'nin CA fraksiyonu (%98,7 saflık) ↓ hücre canlılığı [ 22 ]
        HT-29 (Kolorektal adenokarsinom) 12,5 µg/mL (37.6 µM) CA (2–72 saat) ↓ hücre proliferasyonu
        ↑ hücre döngüsü durması
        ↑ kolesterol birikimi
        ↑ ROS birikimi
        ↑ UPR
        ↑ ER stresi
        ↓ hücre döngüsü genleri
        Değişen kolesterol modüle edici genler
        [ 24 ]
        HT-29 (Kolorektal adenokarsinom), HCT116 (Kolorektal karsinom), SW480 (Kolorektal adenokarsinom) 20–100 µM CA (24 saat) ↓ hücre canlılığı
        ↑ apoptoz
        ↑ p53, Bax, casp 3, casp 9, PARP bölünmesi
        ↑ ROS üretimi
        ↓ MDM2, Bcl-2, Bcl-xL
        ↓ survivin, siklinler STAT3
        [ 53 ]
        HT-29 (Kolorektal adenokarsinom) 8,3–16,6 µg/mL (25–50 µM) CA (24 sa) ↓ hücre çoğalması ↑ H 2 O 2
        ↑ ROS
        [ 25 ]
        Ayrı bir pencerede aç
        MMP-9 (matris metalopeptidaz 9), uPA (ürokinaz plazminojen aktivatörü), COX-2 (siklooksijenaz 2), BCL9-β (B-hücresi CLL/lenfoma 9), GCNT3 (glukozaminil ( N - Asetil) transferaz 3), GSH (glutatyon), CDK4 (sikline bağımlı kinaz 4), Bcl-xL (B-hücreli lenfoma-ekstra büyük), Bax (Bcl-2-benzeri protein 4), Ob-R (leptin reseptörü), ROS (reaktif oksijen türleri) ), UPR (katlanmamış protein yanıtı), ER (endoplazmik retikulum), kasp (kaspaz), p53 (tümör proteini p53), PARP (poli(ADP-riboz) polimeraz), MDM2 (fare çift dakika 2 homologu), Bcl-2 ( B -hücresi CLL/lenfoma 2), STAT3 (sinyal dönüştürücü ve transkripsiyon 3 aktivatörü), H202 ( hidrojen peroksit).

        MCF-7, MDA-MB-231 ve MDA-MB-468 dahil olmak üzere meme kanseri hücrelerinde CA, 1.5-150 µM konsantrasyonlarda hücre proliferasyonunu inhibe etti ve apoptozu artırdı [ 30 , 54 , 55 , 56 ] (Tablo 8). CA'nın inhibe edici etkilerinin meme kanseri hücrelerinde artan antioksidan glutatyon seviyelerine bağlı olduğu ve buna bağlı olarak glutatyon biyosentezinde (CYP4F3, GCLC) ve taşımada (SLC7A11) yer alan genlerin ekspresyonunun da (SLC7A11) önemli ölçüde arttığı bulunmuştur [ 54 ]. Önemli olarak, CA'nın duyarlılığının HER2 ekspresyonu ile ilişkili olduğu bulunmuştur ve bu nedenle MCF-7 hücreleri, HER2'yi eksprese etmeyen üçlü negatif MDA-MB-468 hücre hattına kıyasla CA tedavisine daha duyarlıydı [ 54 ] . Üçlü negatif MDA-MB-361 hücre hattında CA, c-FLIP ve Bcl-2 ekspresyonunun aşağı regülasyonu ve DR5, Bim ve PUMA ekspresyonunun (ER stresi ile ilişkili proteinler) CHOP'a bağlı yukarı regülasyonu yoluyla TRAIL aracılı apoptozu indükledi [ 56], CA'nın, mevcut mutasyonlara bağlı olarak farklı mekanizmalar yoluyla meme kanseri hücresinin hayatta kalmasını engelleyebildiğini öne sürüyor. Tablo 8

        Karnosik Asit'in (CA) antikanser etkileri. In vitro çalışmalar: meme, pankreas, prostat ve yumurtalık kanseri.
        MCF-7 (ER+) (Meme adenokarsinomu), MDA-MB-231 (Meme adenokarsinomu) 6,25–50 µg/mL (18,8–150 µM) CA (48 sa) ↓ hücre canlılığı [ 30 ]
        MCF-7 (Meme adenokarsinomu), MDA-MB-468 (Meme adenokarsinomu) 0,5–40 µg/mL (1,5–120 µM) CA (6–96 sa) ↓ çoğalma
        ↑ apoptoz
        ↑ hücre döngüsü durdurma IC50: 3µg/mL (9 µM) (88 saat)
        ↑ CYP4F3, GCLC, SLC7A11, CDKN1A ifadesi [ 54 ]
        MDA-MB-361 (Meme adenokarsinomu) 20–60 µM CA (24 saat) ↑ apoptoz [ 55 ]
        MDA-MB-361 (Meme adenokarsinomu) 20 µM CA (24 saat) ↓ çoğalma
        ↑ apoptoz
        ↑ TRAIL aracılı apoptoz
        ↓ c-FLIP, Bcl-2
        ↑ DR5, Bim, PUMA, CHOP
        [ 56 ]
        RINm5F (İnsülinoma) 12–100 µg/mL (36.1–300 µM) CA (24–48 sa) ↓ hücre canlılığı [ 27 ]
        MIA-PaCa-2 (Pankreas karsinomu), PANC-1 (Pankreas karsinomu) 2–18 µg/mL (6,02–54,15 µM) CA (48 sa) ↓ hücre canlılığı [ 21 ]
        DU145 (Prostat karsinomu), PC3 (Prostat adenokarsinomu) 6,25–50 µg/mL (18,8–150 µM) CA (48 saat) ↓ hücre canlılığı [ 30 ]
        PC3 (Prostat adenokarsinomu) 20–100 µM CA (0–72 sa) ↓ çoğalma
        ↑ apoptoz
        ↓ casp 8, casp 9, Bcl-2, Bid, IAP, p-Akt, p-GSK3, NF-κB
        ↑ casp 3, casp 7, PARP klevajı, Bax, cyt c, PP2A
        [ 58 ]
        LNCaP (Prostat karsinomu), PC3 (Prostat adenokarsinomu), DU-145 (Prostat karsinomu) 10 µM CA (72 saat) ↓ çoğalma ↓ EpRE/ARE transkripsiyon sistemi
        ↓ PSA salgısı
        [ 57 ]
        A2780 (Yumurtalık kanseri), A2780CP70 (sisplatine dirençli) (Yumurtalık kanseri) 2,5–10 µg/mL (7,2–30 µM) CA (48 sa) ↓ hücre çoğalması
        Sisplatine dirençli hücrelerin gelişmiş duyarlılığı
        [ 34 ]
        Ayrı bir pencerede aç
        CYP4F3 (lökotrien-B(4)omega-hidroksilaz 2), GCLC (glutamat-sistein ligaz katalitik alt birimi), SLC7A11 (solute taşıyıcı aile 7 üye 11), CDKN1A (sikline bağımlı kinaz inhibitörü 1A), TRAIL (TNF ile ilişkili apoptoz -indükleyici ligand), c-FLIP (hücresel FLICE (FADD-like-IL-1β-dönüştürücü enzim)-inhibe edici protein), DR5 (ölüm reseptörü 5), Bim (Bcl-2-like protein 11), PUMA (p53 yukarı regüle edilmiştir) apoptoz modülatörü), CHOP (C/EBP homolog protein), casp (kaspaz), Bcl-2 (B-hücresi CLL/lenfoma 2), Bid (BH3 etkileşim alanı), IAP (apoptoz inhibitörü), p-Akt (fosforile protein kinaz B), p-GSK3 (fosforile glikojen sentaz kinaz 3), NF-κB (nükleer faktör kappa B), PARP (poli (ADP-riboz) polimeraz), Bax (Bcl-2 benzeri protein 4), cyt c (sitokrom c), PP2A (protein fosfataz 2A), EpRE (elektrofile duyarlı element),ARE (antioksidan yanıt elemanı), PSA (prostat spesifik antijen).

        Hücre canlılığının CA tarafından inhibisyonu, 6-300 uM dozlarda sıçan insülinoma (RINm5F) ve insan (MIA-PaCa-2, PANC-1) pankreas kanseri hücrelerinde gösterilmiştir [ 21 , 27 ]. Prostat kanseri hücrelerinde, düşük CA dozları (<100 uM), hücre canlılığını inhibe etti ve apoptozu artırdı [ 30 , 57 , 58 ]. PC-3 prostat hücrelerinde apoptoz indüksiyonu, hem iç hem de dış apoptotik yolların aktivasyonu ile ilişkilendirildi. Kaspaz 8 ve 9, Bcl-2, Bid, IAP, p-Akt, p-GSK3 ve NF-κB'nin inhibisyonu ve kaspaz 3 ve 7, PARP, Bax, sitokrom c ve PP2A'nın aktivasyonu, tümü bu hücrelerde gelişmiş apoptoza katkıda bulunur [ 58]. Bir pan-kaspaz inhibitörünün kullanımı, CA'nın apoptotik etkilerini hafifletti ve prostat kanseri hücrelerinde CA'nın apoptotik mekanizmasında kaspazların yer aldığına dair güçlü kanıtlar sağladı [ 58 ]. Hem tek başına hem de kurkumin gibi diğer bitkisel besinlerle kombinasyon halinde düşük dozlarda CA, LNCaP, PC3 ve DU145 prostat hücrelerinde güçlü antikanser etkileri gösterdi ve androjen reseptör aktivitesini inhibe etti. Bu hücrelerin proliferasyonunun inhibisyonu, EpRE/ARE antioksidan transkripsiyon sisteminin inhibisyonu ve PSA sekresyonunun inhibisyonu ile ilişkilendirilmiştir [ 57 ]. Ayrıca, CA, A2780 yumurtalık kanseri hücrelerinin proliferasyonunu inhibe etti ve dirençli bir A2780CP70 hücre hattının güçlü bir kemoterapötik ajan olan sisplatine duyarlılığını arttırdı. 34]. Karnosik asit kendi başına güçlü antikanser etkilerine sahiptir, ancak aynı zamanda bitkisel besinler ve kemoterapötikler dahil diğer bileşiklerle sinerjistik olarak hareket eder ve bu, antikanser ajanlarının daha düşük dozlarda kombinasyonlarını kullanan gelecekteki kanser tedavileri için umut verici bir yolu temsil eder.

        Hep-3B, HepG2 ve SK-HEP1 insan karaciğer kanseri hücrelerinde, CA hücre canlılığını inhibe etti ve apoptozu artırdı [ 30 , 55 , 56 , 59 ] (Tablo 9). Hep-G2 hücrelerinde, otofajik vakuollerin ve otolizozomların oluşumu, CA tarafından artan hücre ölümüne katkıda bulunmuştur ve bu, Akt/mTOR hücre hayatta kalma yolunun inhibisyonu yoluyla indüklenmiştir [ 59 ]. Ayrıca, SK-HEP1 hücrelerinde CA, c-FLIP, Bcl-2, DR5, Bim, PUMA ve CHOP gibi apoptotik belirteçleri değiştirerek TRAIL aracılı apoptozu indükledi [ 56 ]. Sıçan karaciğer klon 9 hücreleri sıklıkla hepatotoksisiteyi taramak için bir model olarak kullanılır ve CA'nın, glutatyon S -transferazın pi sınıfını düzenleyen ve hücre içindeki antioksidan ve detoksifikasyon sistemlerini modüle eden güçlendirici element GPEI'nin aktivitesini arttırdığı bulunmuştur [ 60 ].]. CA'nın, Nrf2/p38 MAPK sinyal yolu tarafından modüle edilen bu kanserli olmayan karaciğer hücrelerinde koruyucu bir etki gösterdiği bulundu [ 60 , 61 ]. Ayrıca, CA, küçük hücreli akciğer kanseri NCI-H82 hücrelerinin canlılığını inhibe etti [ 30 ]. Tablo 9

        Karnosik Asit'in (CA) antikanser etkileri. In vitro çalışmalar: karaciğer, akciğer, deri ve böbrek kanseri.
        Hep-3B (Hepatoselüler karsinom) 6,25–50 µg/mL (18,8–150 µM) CA (48 sa) ↓ hücre canlılığı [ 30 ]
        HepG2 (Hepatoselüler karsinom) (12-48 saat) için 20–100 µM ↓ çoğalma
        ↑ apoptoz
        ↑ otofajik vakuoller ve otolizozomlar
        ↑ LC-3
        ↓ p-Akt, p-mTOR
        [ 59 ]
        SK-HEP1 (Hepatoselüler karsinom) 20–60 µM CA (24 saat) ↑ apoptoz [ 55 ]
        SK-HEP1 (Hepatoselüler karsinom) 20 µM CA (24 saat) ↓ çoğalma
        ↑ apoptoz
        ↑ TRAIL aracılı apoptoz
        ↓ c-FLIP, Bcl-2
        ↑ DR5, Bim, PUMA, CHOP
        [ 56 ]
        Sıçan klonu 9 (Normal sıçan karaciğeri) 1–20 µM CA (24 saat) ↑ güçlendirici eleman GPEI'nin raportör etkinliği
        ↑ detoksifikasyon sistemleri
        ↑ GSTP ifadesi
        ↑ Nrf2 translokasyonu
        ↑ p38
        [ 60 ]
        Sıçan klonu 9 (Normal sıçan karaciğeri) 1–20 µM CA (0–24 sa) ↓ hücre hayatta kalma ↑ NQO1
        ↑ Nrf2
        ↑ p-p38
        ↑ p-ERK
        [ 61 ]
        NCI-H82 (Akciğer kanseri; SCLC) 6,25–50 µg/mL (18,8–150 µM) CA (48 sa) ↓ hücre canlılığı [ 30 ]
        HT-1080 (Fibrosarkom) 25–100 µM CA (4–72 sa) ↑ apoptosis
        ↑ cell cycle arrest
        ↑ chromatin condensation and DNA fragmentation IC50 9 µM
        [62]
        BAEC Aortic endothelial cells), HUVEC (Umbilical vein endothelial cells) 25–100 µM CA (4–72 h) ↓ cell survival
        ↑ apoptosis
        ↑ cell cycle arrest
        ↓ migration IC50 36µM
        ↓ MMP-2
        ↓ endothelial cell tubulogenesis.
        [62]
        B16F10 (Skin melanoma) 2.5–10 µM CA (12 h) ↓ cell migration and adhesion
        Suppressed mesenchymal markers
        Induced epithelial markers
        ↓ MMP-9, TIMP-1, uPA, VCAM-1
        ↓ p-Src, p-FAK, p-Akt
        [63]
        Caki (Kidney clear cell carcinoma) 20–60 µM CA (24 h) ↑ apoptosis Promotes ROS production ↑ PARP cleavage, casp 3, ATF4, CHOP [55]
        Caki (Böbrek berrak hücreli karsinom), AHCN (Böbrek renal hücreli adenokarsinom), A498 (Böbrek kanseri) 20 µM CA (24 saat) ↓ çoğalma
        ↑ apoptoz
        ↑ TRAIL aracılı apoptoz
        ↓ c-FLIP, Bcl-2
        ↑ DR5, Bim, PUMA, CHOP
        [ 56 ]
        Ayrı bir pencerede aç
        LC3 (hafif zincir 3), p-mTOR (rapamisinin fosforile edilmiş memeli hedefi), TRAIL (TNF tarafından düzenlenen apoptozu indükleyen ligand), c-FLIP (hücresel FLICE (FADD-like-IL-1β-dönüştürücü enzim)-inhibe edici protein ), Bcl-2 (B-hücresi CLL/lenfoma 2), DR5 (ölüm reseptörü 5), Bim (Bcl-2-benzeri protein 11), PUMA (apoptozun p53 yukarı regüle edilmiş modülatörü), CHOP (C/EBP homolog proteini) , GSTP (Glutatyon S-transferaz P), Nrf2 (nükleer faktör E2 ile ilişkili faktör-2), NQO1 (NAD(P)H-kinon oksidoredüktaz 1), p-ERK (fosforile hücre dışı sinyalle düzenlenen kinazlar), MMP-2 (matris metalloproteinaz-2) ), MMP-9 (matris metalopeptidaz-9), TIMP-1 (TIMP metalopeptidaz inhibitörü 1), uPA (ürokinaz plazminojen aktivatörü), VCAM-1 (vasküler hücre yapışma proteini 1), p-Src (proto-onkogen tirozin-proteini) kinaz Src), p-FAK (fosforile fokal yapışma kinazı), PARP (poli(ADP-riboz)polimeraz), kasp (kaspaz).

        HT-1080, BEAC, HUVEC ve B16F10 hücreleri dahil olmak üzere çeşitli cilt kanseri modellerinde, CA hücre sağkalımını, hücre göçünü ve hücre yapışmasını inhibe etti, apoptozu arttırdı ve hücre döngüsü durmasını indükledi [ 62 , 63 ] (Tablo 9). HT-1080 hücrelerinde apoptoza yol açan kromatin yoğunlaşması ve DNA fragmantasyonu görüldü [ 62 ]. İnsan göbek ve sığır aort endotel hücre dizilerinde, CA, tübülogenezi ve MMP-2 ekspresyonunu inhibe ederek, CA'nın antikanser tedavilerinde faydalı olabilecek anti-anjiyogenik özelliklerini ortaya koydu [ 62 ]. B16F10 melanom hücrelerinde epitelyal-mezenkimal geçişin inhibisyonu, CA tarafından hücre göçünün inhibisyonu için olası bir mekanizma önerir. Hücre göçü belirteçleri MMP-9, TIMP-1, uPA ve VCAM-1'in inhibisyonu, düşük dozlarda CA (10 uM) kullanılarak bu hücre hattında görüldü. Akt, FAK ve Src sinyal moleküllerinin fosforilasyonunun inhibisyonu, B16F10 hücrelerinde epitelyal-mezenkimal geçişin ve hücre göçünün inhibisyonu ile de ilişkilendirilmiştir [ 63 ].]. Caki'de, böbrek kanseri hücrelerinde, CA, ROS aracılı endoplazmik retiküler stres yoluyla apoptozu indükledi. Apoptotik belirteçler PARP, kaspaz 3, ATF4 ve CHOP'nin aktivitesi bu hücrelerde artmıştır [ 55 ]. Benzer şekilde, TRAIL aracılı apoptoz, Caki, AHCN ve A498 böbrek hücrelerinde endoplazmik retiküler stresle ilgili proteinler c-FLIP, Bcl-2, DR5, Bim, PUMA ve CHOP'un modülasyonu yoluyla indüklendi [ 56 ].

        T98G glioblastoma hücrelerinde CA, sinir büyüme faktörünün üretimini teşvik eder ve bunun Nrf2 sinyal yolu tarafından düzenlendiği bulunmuştur [ 64 , 65 ] (Tablo 10). Sinir büyüme faktörü, büyümenin düzenlenmesinde ve belirli hedef nöronların korunmasında ve hayatta kalmasında rol oynar ve bu nedenle sinir hücrelerini kansere neden olabilecek toksik ajanlardan korumak için hareket edebilir. IMR-32 nöroblastom hücrelerinde CA, kaspazlar, PARP ve p38 MAPK yolunun aktivasyonu ile apoptozu indükledi ve azalmış ERK aktivasyonu ile ilişkili olan hücre canlılığını inhibe etti [ 66 ]. Bununla birlikte, ilginç bir şekilde, SH-SY5Y nöroblastom hücrelerinde CA, nörotoksik bileşikler metilglioksal ve amiloid β tarafından indüklenen apoptozu zayıflattı ve sitoprotektif bir etki gösterdi [ 67 , 68]. Bu koruyucu etki, PI3K/Akt sinyalinin artan aktivasyonu, sitokrom c salımının inhibisyonu ve hücre üzerinde bir hayatta kalma etkisi ile sonuçlanan kaspaz kaskadlarının inhibisyonu ile ilişkilendirilmiştir [ 36 , 67 ]. Benzer şekilde, U373MG astrositoma hücrelerinde CA, amiloid β peptid üretimini ve salınımını inhibe etti ve bu, en azından kısmen, α-sekretaz TACE/ADAM17'nin aktivasyonu ile ilişkilendirildi [ 69 ]. CA kullanımı, amiloid β aracılı hastalıkların önlenmesinde potansiyele sahip olabilir. Ayrıca, GBM glioblastoma hücrelerinde CA, hücre döngüsü durmasını ve hücre sağkalımı ve olgunlaşma süreçlerinde yer alan moleküller olan siklin B1, RB, SOx2 ve GFAP'nin degradasyonunu indükleyerek apoptozu destekledi [ 70 ]. Tablo 10

        Karnosik Asit'in (CA) antikanser etkileri. In vitro çalışmalar: beyin ve sinir kanseri.
        T98G (Glioblastom) 5–100 µM CA (0–48 sa) ↑ NGF sentezi [ 64 ]
        T98G (Glioblastom) 2–50 µM CA (24 saat) ↑ NGF sentezi
        ↑ Nrf2, HO-1, TXNRD1
        [ 65 ]
        IMR-32 (Nöroblastom) 5–40 µM CA (0–48 sa) ↓ hücre canlılığı
        ↑ apoptoz
        ↑ ROS üretimi
        ↑ casp 3, casp 9, PARP, p-p38
        ↓ p-ERK
        [ 66 ]
        U373MG (Glioblastom) 50 µM CA (8 saat) ↓ amiloid beta peptit salınımı ↑ α-sekretaz TACE/ADAM17 [ 69 ]
        SH-SY5Y (Nöroblastom) 1 µM CA (12 saat) ↑ antioksidan savunma
        ↑ detoksifikasyon sistemleri
        Apoptozun bloke aktivasyonu
        ↑ PI3K/Akt
        ↓ sitokrom c salınımı
        ↓ kaspaz kaskadı
        [ 67 ]
        SH-SY5Y (Nöroblastom) 10 µM CA (1 saat) ↓ apoptoz ↓ kaspaz çağlayanı [ 68 ]
        GBM (Glioblastoma) 17,5–40 µM CA (48 saat) ↓ hücrenin hayatta kalması
        ↑ hücre döngüsü durması
        ↑ apoptoz
        ↓ CDK aktivitesi
        ↓ siklin B1
        ↓ RB
        ↓ SOX2
        ↓ GFAP
        [ 70 ]
        Ayrı bir pencerede aç
        NGF (sinir büyüme faktörü), Nrf2 (nükleer faktör E2 ile ilgili faktör 2), HO-1 (heme oksijenaz-1), TXNRD1 (tioredoksin redüktaz 1), kasp (kaspaz), PARP (poli(ADP-riboz)polimeraz) , p-ERK (fosforile hücre dışı sinyalle düzenlenen kinazlar), TACE (TNF-a dönüştürücü enzim), ADAM17 (ADAM metalopeptidaz alanı 17), PI3K (fosfatidilinositol-4,5-bifosfat 3-kinaz), Akt (protein kinaz B) , cyt c (sitokrom c), CDK (sikline bağımlı kinaz), RB (retinoblastoma), SOX2 (cinsiyet belirleyen bölge Y kutusu 2), GFAP (glial fibril asidik protein).

        Lösemi, genellikle kemik iliğinde gelişen ve tam olarak gelişmemiş çok sayıda beyaz kan hücresinin kan dolaşımına salınmasıyla sonuçlanan bir kanserdir. Lösemi için çoğu tedavi seçeneği, bu olgunlaşmamış beyaz kan hücrelerinin olgun, farklılaşmış hücrelere farklılaşmasını destekleyen ajanları içerir. Ne yazık ki, bu farklılaştırıcı ajanların daha yüksek dozları ile ilişkili birçok yan etki vardır ve antikanser etkilerini görmek için gerekli dozu düşürmek için stratejiler gereklidir. Kullanılan bu tür bir ajan la25-dihidroksiviatmin D'dir (1,25D). Birçok çalışma, düşük dozlarda CA (5-10 µM) 1,25D'nin farklılaşma öncesi etkilerini güçlendirebildiğini ve insan HL-60, U937, MOLM-13 ve fare WEHI-3B hücreleri dahil lösemi hücrelerini hassaslaştırmaya yardımcı olduğunu bulmuştur. [ 40 , 41,71 , 72 , 73 , 74 , 75 , 76 , 77 , 78 ] antikanser etkilerine (Tablo 11). Ayrıca, CA hücre canlılığını inhibe etti ve çok sayıda farklı strateji kullanarak bu hücrelerde apoptozu ve hücre döngüsü durmasını indükledi. HL-60 hücrelerinde, CA, D vitamini ve retinoik asit reseptörlerinin ekspresyonunu arttırdı, böylece hücrelerin 1,25D'ye duyarlılığını arttırdı [ 71 ] ve tümör baskılayıcı fonksiyonlara sahip olabilen hücre döngüsü düzenleyicileri p21 Waf1 , p27 Kip1'in ekspresyonunu arttırdı. [ 72 ]. Karnosik asit ayrıca, hücrelerin kimyasal olarak indüklenen karsinojenezden korunmasına yardımcı olan antioksidan GSH ve faz II enzimi NADP(H)-kinon redüktaz seviyelerini arttırdı ve hücrelerin çoğalması ve farklılaşmasında rol oynayan ERK ve JNK dahil olmak üzere MAPK yolları aracılığıyla sinyal iletimini geliştirdi [ 40 ,73, 74 , 75 , 79 ]. K562 lösemi hücrelerinde CA, hücre canlılığını inhibe etti ve dirençli hücreleri bir kemoterapötik ajan olan adriamisine duyarlı hale getirdi [ 30 , 80 ]. Benzer şekilde, CA, 1,25D gibi D vitamini türevlerinin uygulanmasıyla ilişkili yaygın kalsifikasyon sorununu önlemeye yardımcı olan bir ajan olan doxercaliferol'ün aktivitesini ve hücre proliferasyonu ile bağlantılı olan mikroRNA181a düzeylerinin azalmasını arttırdı [ 81 ]. Artmış GSH ve NADPH seviyeleri sergileyen U937, HL-60 ve NB4 lösemik hücrelerde CA tarafından antioksidan etkiler de üretildi ve CA arsenik trioksit kaynaklı sitotoksik etkileri iyileştirdi [ 79]. Hücre sağkalımını değiştirebilen Nrf2/ARE sinyal yolunun aktivasyonu da görülmüştür [ 77 , 79 ]. Yazarlar, Nrf2/ARE yolunun, 1,25D ve CA ile lösemi hücre farklılaşmasının ortak indüksiyonunda muhtemelen önemli bir rol oynadığını öne sürüyorlar [ 77 ]. Önemli olarak, HL-60 hücrelerinde CA, PTEN ekspresyonunu ve kaspaz bölünmesini arttırdı ve gelişmiş apoptoz ile ilişkili olan Bad ve Akt fosforilasyonunu inhibe etti [ 62 , 82 ]. CA'nın PTEN/Akt sağkalım yolu üzerindeki güçlü inhibitör etkileri, onu lösemi tedavisi için diğer tedavilerle kombine edilmeye iyi bir aday yapar. Tablo 11

        Karnosik Asit'in (CA) antikanser etkileri. In vitro çalışmalar: lösemi.
        HL-60 (Miyeloid lösemi) 10 µM CA (0–48 saat) 1,25D ↑ farklılaşma
        ↓ proliferasyon
        ↑ hücre döngüsü durmasının CA güçlendirilmiş etkileri
        ↑ D vitamini reseptörü, retinoik asit reseptörü [ 71 ]
        HL-60 (Miyeloid lösemi), U937 (Miyeloid lösemi) 2,5–10 µM CA (0–48 sa) 1,25D ↑ farklılaşma
        ↓ çoğalma
        ↑ hücre döngüsü durdurma IC50 6–7µM'nin CA güçlendirilmiş etkileri
        ↑ p21 Waf1 , p27 Kip1 [ 72 ]
        HL-60-G (Miyeloid lösemi) 10 µM CA (0–48 saat) 1,25D ↑ farklılaşmasının CA güçlendirilmiş etkileri
        ↓ ROS
        ↑ GSH
        ↑ Raf/MAPK/ERK, AP-1
        [ 73 ]
        HL-60 (Miyeloid lösemi) 10 µM CA (0–72 saat) 1,25D ↑ farklılaşmasının CA güçlendirilmiş etkileri ↑ JNK yolu [ 74 ]
        WEHI-3B (Murin miyeloid lösemi), HL-60 (Miyeloid lösemi), U937 (Miyeloid lösemi) 10 µM CA (0–96 sa) 1,25D ↑ farklılaşma
        ↓ proliferasyon
        ↑ hücre döngüsü durmasının CA güçlendirilmiş etkileri
        [ 41 ]
        WEHI-3B D (Murin miyeloid lösemi) 10 µM CA (48–96 saat) 1,25D'nin CA güçlendirilmiş etkileri
        ↑ hücre farklılaşması
        ↓ hücre canlılığı
        ↓ hücre proliferasyonu
        ↓ ROS
        ↑ NADP(H)-kinon redüktaz
        [ 40 ]
        K562 (Miyeloid lösemi) 2,5–50 µM CA (24–72 sa) ↓ hücre canlılığı CA, dirençli hücreleri Adriamisin'e duyarlı hale getirdi [ 80 ]
        HL-60G (Myeloid leukemia), HL-60-40AF (Myeloid leukemia) 10 µM CA (0–48 h) CA potentiated effects of 1,25-D
        ↑ differentiation
        ↑ JNK1, c-jun-ATF2, C/EBP [75]
        K-562 (Myeloid leukemia) 6.25–50 µg/mL (18.8–150 µM) CA (48 h) ↓ cell viability [30]
        U937 (Myeloid leukemia) 10 µM CA (96 h) CA potentiated effects of 1,25-D
        ↑ differentiation
        ↑ Nrf2, ARE, NADPH, [77]
        HL-60 (Myeloid leukemia), U937 (Myeloid leukemia) 10 µM CA (48 h) Enhances activity of 1,25D
        ↑ cell cycle arrest Induces differentiation Sensitizes 1,25D resistant cells
        ↑ HPK1 [76]
        HL-60 (Myeloid leukemia), U937 10 µM CA (48 h) Enhances activity of doxercalciferol
        ↑ cell cycle arrest Induces differentiation
        ↓ microRNA181a [81]
        HL-60 (Myeloid leukemia) 5–25 µM CA (24–72 sa) ↓ canlılık
        ↑ apoptoz
        ↑ hücre döngüsü durması
        ↑ p27, bölünmüş kasp 9, PTEN ifadesi
        ↓ p-BAD, p-Akt
        [ 82 ]
        HL-60 (Miyeloid lösemi) 25–100 µM CA (4–72 sa) ↓ hücre hayatta kalma
        ↑ apoptoz
        ↑ hücre döngüsü durdurma IC50 5,7 µM
        ↑ kasp 3 [ 62 ]
        HL-60 (Miyeloid lösemi), U937 (Miyeloid lösemi), MOLM-13 (Akut monositik lösemi) 10 µM CA (96 saat) 1,25-D ↑ farklılaşmasının CA güçlendirilmiş etkileri [ 78 ]
        NB4 (İnsan promyelositik lösemi) 5 µM CA (24 saat) Arsenik trioksit kaynaklı sitotoksik etkileri iyileştirir ↑ GSH seviyeleri
        Nrf2 aktivasyonu
        [ 79 ]
        Ayrı bir pencerede aç
        1,25-D (1α25-dihidroksiviatminD), GSH (glutatyon), Raf (hızlı hızlandırılmış fibrosarkom), MAPK (mitojenle aktive olan protein kinaz), ERK (hücre dışı sinyalle düzenlenen kinazlar), AP-1 (aktivatör protein 1), JNK (c-jun N-terminal kinazlar), ROS (reaktif oksijen türleri), c-jun (v-jun sarkom virüsü 17 onkogen), ATF2 (transkripsiyon faktörü 2'yi aktive eder), Nrf2 (nükleer faktör E2 tarafından düzenlenen faktör-2) , ARE (antioksidan yanıt elemanı), HPK1 (hematopoietik progenitör kinaz 1), kasp (kaspaz), PTEN (fosfataz ve tensin homologu).

        Git: 7. Karnosik Asidin (CA) Antikanser Etkileri: In Vivo Hayvan Çalışmaları

        Yukarıdaki in vitro çalışmalar, çeşitli kanser hücre dizilerinde CA varsa antikanser etkileri için güçlü kanıtlar sağlar. Hayvan modellerini kullanan birkaç çalışma da in vivo olarak CA'nın etkilerini araştırdı ve hem hayvan hem de insan modellerinde CA'nın antikanser mekanizmalarını araştıran gelecekteki araştırmaları destekleyen önemli antikanser etkileri buldu (Tablo 12). Hamsterlerin kullanıldığı DMBA ile indüklenen ağız kanseri modellerinde, 14 hafta boyunca ağızdan uygulanan 10 mg/kg/gün CA kullanımının hayvanlardaki tümör sayısının önemli ölçüde azalmasına neden olduğu gösterilmiştir. Ayrıca, detoksifikasyon enzimlerinin ekspresyonu arttı [ 83 ], p53, Bax, Bcl-2 ve kaspazlar dahil apoptoz belirteçleri arttı [ 84 ] ve COX-2, c-fos, KF-κB ve siklin dahil hücre büyümesinin düzenleyicileri D1 azaldı [ 84 ]. Aynı hamster modelini kullanarak, 11 hafta boyunca günlük olarak uygulanan 0.1 mL salin (20 uM) içinde çözülmüş 750 µg CA, lezyonların ilerlemesini ve ağız kanseri gelişimini önemli ölçüde yavaşlattı [ 85]. İnsan biyopsilerinden prostat numuneleri ile ksenograflanmış farelerde, 25 gün boyunca günlük olarak uygulanan 100 µL pamuk tohumu yağı içinde çözülmüş 100 mg CA, tümör büyümesini azalttı [ 86 ]. Azoksimetan farelerde kolon kanserini indüklemek için kullanıldı ve 11 hafta boyunca yüksek yağlı (%45) bir diyetle beslenen %0.01-%0.02 CA hem tümör boyutunu hem de tümör sayısını azalttı ve hücre metabolizması ve hücre büyümesinde rol oynayan sinyal moleküllerini modüle etti. 52 ]. Tedaviden sonra farelerden alınan serum numuneleri, insülin, leptin ve IGF-1 düzeylerinde azalma gösterdi ve doku örneklerinin analizi, ilişkili insülin ve leptin reseptörlerinde bir azalmanın yanı sıra ERK aktivitesinde ve siklin D1 ve Bcl ekspresyonunda azalma gösterdi. hücre sağkalımını düzenleyen xL [ 52]. Standart toz diyetle %1 CA ile beslenen K562 lösemi aşılanmış farelerde, kısmen gelişmiş apoptoza atfedilen lösemik hücre sayısında bir azalma olmuştur [ 87 ]. Ayrıca, hayvanların hayatta kalma süresi önemli ölçüde arttı [ 87 ]. Genel olarak, CA, çeşitli kanser türlerinin fare ve hamster modellerinde önemli antikanser etkileri gösterir ve bu kanıt, insanlarda kansere karşı kullanılma potansiyelini destekler. Tablo 12

        Karnosik Asit'in (CA) antikanser etkileri. Canlılarda yapılan çalışmalar.
        DMBA'nın neden olduğu oral kanser-hamster 10 mg/kg/gün CA (14 hafta) ↓ Tümör sayısı Anti-lipid peroksidatif fonksiyon
        ↑ detoksifikasyon enzimleri
        [ 83 ]
        DMBA'nın neden olduğu oral kanser-hamster 14 hafta boyunca oral yoldan 10 mg/kg/gün CA ↓ # tümör ↑ p53, Bax, Bcl-2, casp 3, casp 9
        ↓ COX-2, c-fos, NF-κB, siklin D1
        [ 84 ]
        Farelere ksenograflanmış insan prostat biyopsileri 100 mg/fare günlük 100 µL pamuk tohumu yağında çözülür (25 gün) ↓ tümör büyümesi [ 86 ]
        DMBA'nın neden olduğu oral kanser-hamster 750 µg CA, (11 hafta) boyunca 0.1 mL salin (20 µM) içinde çözülmüştür. ↓ kanserin ilerlemesi ve lezyonların gelişimi [ 85 ]
        AOM kaynaklı kolon kanseri-fareler %0.01-%0.02 CA yüksek yağlı (%45) diyetle beslendi (11 hafta) ↓ tümör sayısı
        ↓ tümör boyutu
        ↓ tek başına HFD ile beslenen farelere kıyasla insülin, leptin ve IGF-1 serum seviyeleri
        ↓ insülin reseptörü, leptin reseptörü, p-ERK, siklin D1, Bcl-xL ekspresyonu
        [ 52 ]
        K562 lösemi aşılanmış fare Standart toz kemirgen diyeti ile % 1 ( v / v ) CA Ad libitum ↓ lösemi hücrelerinin sayısı
        ↑ apoptotik hücreler
        ↑ hayatta kalma süresi
        [ 87 ]
        Ayrı bir pencerede aç
        Bax (Bcl-2 benzeri protein 4), Bcl-2 (B-hücresi CLL/lenfoma 2), kasp (kaspaz), COX2 (siklooksijenaz 2), NF-κB (nükleer faktör kappa B), IGF-1 (insülin -benzeri büyüme faktörü 1), HFD (yüksek yağlı diyet), p-ERK (fosforile hücre dışı sinyalle düzenlenen kinaz), Bcl-xL (B hücreli lenfoma-ekstra büyük), # (sayı).

        Git: 8. Rosmarinik Asidin (RA) Antikanser Etkileri: İn Vitro Çalışmalar

        HT29 kolon kanseri hücrelerinin RA (5–20 μM) ile tedavisi COX2 promotör aktivitesinde ve COX2 protein seviyelerinde azalmaya yol açar [ 88 ] (Tablo 13). HCT15 ve CO115 kolon kanseri hücrelerinde, RA (10–100 μM) apoptozu indükledi ve hücre proliferasyonunu regüle eden fosforile-ERK düzeylerini azalttı [ 89 ]. Rosmarinik asit (55-832.6 µM), Ls174-T kolon hücrelerinde azalmış migrasyon ve yapışma oranları ile ilişkili olan ROS seviyelerini azalttı [ 90 ]. Ayrıca, CO115 hücrelerinin RA (50 μM) ile tedavisi, BCNU'nun neden olduğu DNA hasarına karşı koruma sağlayarak, potansiyel kemopreventif etkileri düşündürür [ 91 ]. MCF-7 ve MDA-MB-231 meme kanseri hücrelerinin RA (0-300 μM) ile tedavisi hücre canlılığını azalttı [ 30 , 92 , 93 , 94 ] (Tablo 13). Rosmarinik asit, hastalıkla ilişkili DNA'nın hiper-metilasyonunu inhibe eden metiltransferaz aktivitesini azalttı [ 93 ] ve dirençli bir hücre hattını (MCF-7/Adr) kemoterapötik ajan Adriamisin'e [ 94 ] karşı duyarlı hale getirdi. Tablo 13

        Rosmarinic Asit'in (RA) antikanser etkileri. In vitro çalışmalar: kolon, meme, prostat, yumurtalık, mide ve cilt kanseri.
        HT-29 (Kolorektal adenokarsinom) 5–20 μM RA (1 saat) ↓ TPA ile indüklenen COX2 promotör aktivitesi ↓ COX2 protein seviyeleri [ 88 ]
        HCT15 (Kolorektal adenokarsinom), CO115 (Kolorektal karsinom) 10–100 μM RA (48 saat) ↑ HCT15 (50 μM) ve CO115 (100 μM) apoptozu ↓ HCT15 hücrelerinde p-ERK seviyeleri [ 89 ]
        Ls174-T (Kolorektal adenokarsinom) 20–300 μg/mL (55.5–832.6 μM) RA (24 saat) ↓ migrasyon hızı
        ↓ yapışma IC50 70 μg/mL
        ↓ ROS [ 90 ]
        CO115 (Kolorektal karsinom) 50 μM RA (24 saat) ↓ BCNU kaynaklı DNA hasarı [ 91 ]
        MCF-7 (Meme adenokarsinomu) 60 μM RA (24 saat) ↓ hücre canlılığı [ 92 ]
        MCF7 (Meme adenokarsinomu) 2-200 μM RA (72 saat) ↓ DNA metiltransferaz aktivitesi [ 93 ]
        MCF-7 (ER+) (Meme adenokarsinomu), MDA-MB-231 (Meme adenokarsinomu) 6,25–50 µg/mL (17,3–138,8 µM) RA (48 saat) ↓ hücre canlılığı [ 30 ]
        MCF-7/Adr (Meme adenokarsinomu), MCF-7/wt (Meme adenokarsinomu) 0,08–10 mM RA EC değerleri: 0,74 mM (ağırlıkça) ve 0,81 mM (Adr dirençli olarak) 0,08-0,32 mM RA etkili
        ↑ MCF-7 hücrelerine sitotoksisite
        [ 94 ]
        DU145 (Prostate carcinoma), PC3 (Prostate adenocarcinoma) 6.25–50 µg/mL (17.3–138.8 µM) RA (48h) ↓ cell viability [30]
        A2780 (Ovarian carcinoma), A2780CP70 (Ovarian carcinoma) 2.5–10 µg/mL (6.9–27.8 µM) RA (48 h) ↓ cell proliferation Enhanced sensitivity of cisplatin-resistant cells [34]
        SGC7901/Adr (Gastric carcinoma) 0.096–60 μM RA (48 h) ↓ cell viability Reversed drug resistance ↓ expression of p-glycoprotein
        ↓ activity of p-glycoprotein
        [95]
        MKN45 (Gastric carcinoma) 200–300 μM RA ↓ cell viability
        ↓ Warburg effect
        ↓ glucose uptake
        ↓ pro-inflammatory cytokines (IL-6 and STAT3)
        [96]
        B16 (Skin melanoma) 1–100 μM RA (48 h) ↑ melanin içeriği
        ↑ tirozinaz ifadesi
        ↑ CREB fosforilasyonu [ 97 ]
        Ayrı bir pencerede aç
        TPA (12- O -tetradekanoilforbol-13-asetat), COX2 (siklooksijenaz 2), ERK (hücre dışı sinyalle düzenlenen kinazlar), ROS (reaktif oksijen türleri), BCNU (1,3 - bis -(2-kloroetil)-1 -nitosourea), IL-6 (interlökin-6), STAT3 (sinyal dönüştürücü ve transkripsiyon 3 aktivatörü) CREB (cAMP yanıt elemanı bağlayıcı protein) wt (yabani tip), Adr (Adriamisin).

        DU145 ve PC3 prostat kanseri hücrelerinde RA (17,3-138,8 µM) hücre canlılığını azalttı [ 30 ] ve A2780 ve A2790CP70 yumurtalık kanseri hücrelerinde RA (6,9-27,8 µM) hücre proliferasyonunda azalmaya yol açtı ve sisplatine dirençli duyarlılığın artmasına neden oldu hücreler [ 34 ] (Tablo 13). SCG7901/Adr mide kanseri hücrelerinde, RA'nın (0.096-60 μM) hücre canlılığını, ilaç direncini, ekspresyonunu ve p-glikoprotein aktivitesini azalttığı bulundu [ 95 ]. Ayrıca, MKN45 mide kanseri hücrelerinin RA (200–300 μM) ile tedavisi, hücre canlılığında, Warburg etkisi/glikoz alımında ve proinflamatuar sitokinlerde azalmaya yol açar [ 96 ]. B16 melanom hücrelerinde, RA'nın (1-100 µM) melanin içeriğini, tirozinaz ekspresyonunu ve CREB fosforilasyonunu arttırdığı bulundu [ 97 ].

        HepG2 karaciğer kanseri hücrelerinin RA (25-250 μM) ile tedavisi okratoksin ve aflatoksin aracılı hücre hasarını, apoptozu, ROS seviyelerini ve kaspaz 3 aktivasyonunu azalttı [ 98 ] (Tablo 14), RA'nın koruyucu etkiler gösterebileceğini ve toksik ajanların neden olduğu sitotoksisiteyi önleyebileceğini düşündürmektedir. Alternatif olarak, sitotoksik ajanların bulunmadığı HepG2 hücrelerinde RA (13.9 ve 27.8 µM) apoptozda bir artışa yol açar, bu da kaspaz 8, NNFBIA, TNFSF9 ve Jun mRNA'sında bir artış ve Bcl-2 mRNA'sında bir azalma ile bağlantılıdır. seviyeler [ 99 ]. Bu nedenle, RA, karaciğer hücrelerinde birkaç potansiyel antikanser mekanizmasına sahiptir. Hep-3B karaciğer kanseri hücrelerinde, RA'nın (17.3-138.8 uM) hücre canlılığını azalttığı [ 30 ] bulunurken, HepG2 karaciğer kanseri hücrelerinin RA (20-80 μM) ile tedavisinin hücre canlılığında önemli bir değişiklik göstermediği ancak bir artış gösterdiği bulunmuştur. Nrf2 nükleer translokasyonunda, ARE-lusiferin aktivitesi, MRP2 seviyeleri, hücre içi ATP seviyeleri ve p-glikoprotein akışı görüldü [ 100]. NCI-H82 ve A549 akciğer kanseri hücrelerinde RA (10-500 uM), hücre büyümesini azalttı [ 30 , 101 ], bu da azalmış hCOX2 aktivitesi ile ilişkiliydi, bu da RA'nın anti-inflamatuar bir rolü olduğunu düşündürür [ 101 ]. Tablo 14

        Rosmarinic Asit'in (RA) antikanser etkileri. In vitro çalışmalar: karaciğer ve akciğer kanseri.
        HepG2 (Hepatoselüler karsinom) 25–250 μM RA (24 saat) ↓ OTA- ve AFB ile indüklenen hücre hasarı ve apoptoz
        ↓ OTA- ve AFB- tarafından indüklenen DNA ve protein sentezi inhibisyonu
        ↓ ROS üretimi
        ↓ capase-3 aktivasyonu
        [ 98 ]
        HepG2 (Hepatoselüler karsinom) 5–10 μg/mL (13.9–27.8 μM) RA (72 saat) ↑ apoptoz ↑ casp 8, NBIA, TNFSF9 ve Jun mRNA
        ↓ Bcl-2 mRNA ifadesi
        [ 99 ]
        HepG2 (Hepatoselüler karsinom) 60 μM RA (24 saat) ↓ hücre canlılığı [ 92 ]
        Hep-3B (Hepatoselüler karsinom) 6,25–50 µg/mL (17,3–138,8 µM) RA (48 saat) ↓ hücre canlılığı [ 30 ]
        HepG2 (Hepatoselüler karsinom) 20–80 μM RA (24 saat veya 4 gün) ↔hücre canlılığı ↑ Nrf2 translokasyonu
        ↑ ARE-lusiferin aktivitesi
        ↑ p-glikoprotein akışı
        ↑ MRP2
        ↑ hücre içi ATP
        [ 100 ]
        NCI-H82 (Akciğer kanseri; SCLC) 6,25–50 µg/mL (17,3–138,8 µM) RA (48 saat) ↓ hücre canlılığı [ 30 ]
        A549 (Akciğer adenokarsinomu) 10-500 μM RA (48 saat) IC50 198.12 ↓ hücre çoğalması ↓ hCOX2 aktivitesi [ 101 ]
        Ayrı bir pencerede aç
        OTA (okratoksin), AFB (Aflatoksin), ROS (reaktif oksijen türleri), kasp (kaspaz), NBBIA (B-hücreleri inhibitörü-alfada kappa hafif polipeptit gen geliştiricinin nükleer faktörü), TNFSF9 (tümör nekroz faktörü ligand süper aile üyesi 9), Jun (v-jun sarkom virüsü 17 onkogen), Bcl-2 (B-hücreli KLL/lenfoma 2), Nrf2 (nükleer faktör E2 ile ilişkili faktör-2), ARE (antioksidan yanıt elemanı), MRP2 (çoklu ilaç direnci -ilişkili protein 2), ATP (adenosin trifosfat), hCOX2 (insan siklooksijenaz 2).

        K562 lösemi hücrelerinin RA ile tedavisi, hücre canlılığını inhibe etti [ 30 ] ve hiperozmoz ile indüklenen apoptoz indüksiyonunu ve ilişkili ROS/RNS üretimini tersine çevirdi [ 102 ] (Tablo 15). U937 lösemi hücrelerinde, RA (60 μM), TNF-α ile indüklenen apoptozu arttırdı ve TNF-α ile indüklenen-NF-κB aktivasyonunu ve ROS üretimini azalttı [ 92 ]. Şaşırtıcı bir şekilde, hücre sağkalımını düzenleyen AKT1 ve ERK2 seviyeleri, U937 veya K562 hücrelerinde RA tedavisinden etkilenmedi [ 42 ]. Rosmarinik asit (40 μM), hücre yüzeyinde CD11b ekspresyonundaki bir artışın aracılık ettiği ATRA tarafından indüklenen makrofaj farklılaşmasını arttırdı [ 103 ]. HL-60 lösemi hücrelerinde, RA (50-150 μM) hücre büyümesini inhibe etti ve azalmış dNTP seviyeleri ile ilişkili olan apoptozu indükledi [ 104 ]]. RA (3–100 μM) ile tedavi edilen CCRF-CEM, CEM/ADR5000 lösemi hücreleri, artan PARP bölünmesi ve p65 nükleer translokasyonunun blokajının aracılık ettiği artmış sitotoksisite, apoptoz, nekroz, hücre döngüsü durması ve kaspazdan bağımsız apoptoz geliştirdi [ 105 ] . Diğer çalışmalarla uyumlu olarak, RA (0.07-2.2 mM), HL-60 lösemi hücrelerinde DNA koruyucu ve anti-kanserojen etkiler göstermiştir [ 106 ]. Tablo 15

        Rosmarinic Asit'in (RA) antikanser etkileri. In vitro çalışmalar: lösemi.
        K562 (Miyeloid lösemi) 25 μM RA (1 saat) ↓ hiperozmotik aracılı ROS/RNS üretimi ve apoptoz [ 102 ]
        U937 (Miyeloid lösemi) 60 μM RA (24 saat) ↑ TNF-α ile indüklenen apoptoz ↓ NF-κB aktivasyonu
        ↓ ROS üretimi
        ↑ kaspazlar
        [ 92 ]
        K562 (Miyeloid lösemi) 6,25–50 µg/mL (17,3–138,8 µM) (48 saat) ↓ hücre canlılığı [ 30 ]
        K562 (Miyeloid lösemi), U937 (Miyeloid lösemi) 0,2 mM RA (48 saat) Proliferasyon üzerinde test edilmedi ↔ AKT1
        ↔ ERK2
        [ 42 ]
        NB4 (İnsan promyelositik lösemi) 40 μM RA (72 saat) ↑ ATRA kaynaklı makrofaj farklılaşması ↑ CD11b ifadesi [ 103 ]
        HL-60 (Miyeloid lösemi) 50–150 μM RA (24–72 saat) ↓ hücre büyümesi
        ↑ apoptoz
        IC50 147 μM (24 sa), 74 μM (48 sa), 69 μM (72 sa)
        ↓ dNTP seviyeleri [ 104 ]
        CCRF-CEM (Lenfoblastik lösemi), CEM/ADR5000 (Lenfoblastik lösemi) 3–100 μM RA (72 saat) ↑ sitotoksisite
        ↑ apoptoz ve nekroz
        ↑ hücre döngüsü durması
        ↑ kaspazdan bağımsız apoptoz
        ↑ PARP-klevajı Sitozolden bloke edilmiş p65 nükleer translokasyonu [ 105 ]
        HL-60 (Miyeloid lösemi) 0,07–2,2 mM RA (72 saat) DNA koruması ve antikanserojenik etkiler [ 106 ]
        Ayrı bir pencerede aç
        ROS (reaktif oksijen türleri), RNS (reaktif nitrojen türleri), TNF-a (tümör nekroz faktörü-alfa), NF-KB (aktif B hücrelerinin nükleer faktör kappa-hafif zincir güçlendiricisi), Akt (protein kinaz B) , ERK (hücre dışı sinyalle düzenlenen kinazlar), ATRA (tüm trans retinoik asit), dNTP (deoksi-nükleosit trifosfat), PARP (poli(ADP-riboz) polimeraz).

        Git: 9. Rosmarinic Asit'in (RA) Antikanser Etkileri: In Vivo Hayvan Çalışmaları

        Farklı kanser hücre dizilerinin kullanıldığı in vitro çalışmaların yanı sıra, hayvan kanser modellerinde RA'nın kullanıldığı birçok çalışma yapılmıştır. TPA tedavisinden önce 0.25-1.35 mg RA (30 dakika) uygulamasının farelerde miyeloperoksidaz aktivitesini ve COX2 indüksiyonunu azalttığı bulundu [ 107 ] (Tablo 16). Lewis akciğer karsinomu ksenograflı farelerde 1-4 mg/kg RA (20 gün) kullanılması, tümör büyümesinin azalmasına yol açar [ 90 ] ve 100 mg/kg RA (14 hafta), hamsterlerin bukkal keselerinde DMBA ile indüklenen tümör oluşumunu azaltır [ 108 ] ]. Hayvanın yaşamının 4. haftasından 12. haftasına kadar 360 mg/kg RA verilmesi, farelerde büyük adenomların sıklığını azaltmıştır [ 109 ]. 16 hafta boyunca 2.5-10 mg/kg RA verilen sıçanlar, DMH ile indüklenen bakteriyel enzimlerin yükselmesini azaltarak DMH ile indüklenen anormal kript odaklarının gelişiminde bir azalma gösterdi. 110 ].]. Farelerde DMBA tedavisinden 1 hafta önce 100 mg/kg RA uygulanması, faz I (cyt p450) ve faz II (GST, GR, GSH) detoksifikasyon ajanlarının seviyelerini artırarak ve kaspaz 3, kaspaz 9 seviyelerini geri yükleyerek cilt tümörlerini azalttı, p53 ve Bcl-2 [ 111 ]. Venkatachalam, et al. 4 hafta boyunca sıçanlara verilen 2.5, 5 ve 10 mg/kg RA'nın DMH ile indüklenen kolon tümörü oluşumunu, polip sayısını, antioksidan durumunu, CYP450 içeriğini, PNPH aktivitesini azalttığını ve oksidatif stres belirteçlerini tersine çevirdiğini buldu [ 112 ]. 2 hafta boyunca 1.3 mg/mL RA verilen hamsterlerin DMBA tarafından indüklenen tümör insidansında azalma, tümör derecesi puanlamasında azalma ve tümör farklılaşmasında artış olduğu bulundu [ 113]. Farelere 14 gün boyunca 2 mg/kg'da verilen rosmarinik asit, azalmış glikoz alımının aracılık ettiği bir anti-Warburg etkisine sahipti [ 96 ]. Ayrıca, 30 hafta boyunca 5 mg/kg RA uygulamasının, farelerde TNF-α, IL-6 ve COX2 seviyelerinde azalma yoluyla DMH ile indüklenen kolon tümörü oluşumunu azalttığı bulundu [ 110 ]. Birlikte ele alındığında, bu çalışmalar, hayvan modellerinde RA'nın antikanser etkileri için kanıt sağlar ve tümör büyümesi ve ilerlemesinin inhibisyonundan sorumlu olabilecek çeşitli mekanizmalar önerir. Tablo 16

        Rosmarinic Asit'in (RA) antikanser etkileri. Canlılarda yapılan çalışmalar.
        Yedi-Dokuz haftalık erkek Balb/c fareleri TPA tedavisinden önce 0.25, 0.5, 1.0 ve 1.35 mg/fare (30 ay) ↓ miyeloperoksidaz aktivitesi ↓ COX2 indüksiyonu [ 107 ]
        Lewis akciğer karsinomu implante edilmiş C57BL/6 fareleri 1, 2 ve 4 mg/kg RA (20 gün) ↓ tümör büyümesi [ 90 ]
        Altın Suriye hamsterları 100 mg/kg RA (14 hafta) DMBA ile tedavi edilen hamsterlarda tümör oluşumunu tamamen önledi ↓ p53
        ↓ Bcl-2
        [ 108 ]
        C57BL/6J Min/+ (Apc Min ) fareler 360 mg/kg RA (8 hafta) ↓ büyük adenomların sıklığı ↑ plazmadaki ana bileşik seviyeleri [ 109 ]
        DMH kaynaklı kolon kanseri (Albino Wistar erkek sıçanlar) 2.5-10 mg/kg RA (16 hafta) intragastrik entübasyon yoluyla ↓ DMH kaynaklı anormal kript odakları ↓ Bakteriyel enzimlerde DMH kaynaklı artış [ 110 ]
        DMBA kaynaklı cilt kanseri (İsviçre albino fareleri) DMBA tedavisinden önce uygulanan 100 mg/kg RA (1 hafta) ↓ cilt tümörleri ↑ faz I (cyt p450) detoksifikasyon ajanlarının
        durumu ↑ faz II (GST, GR, GSH) detoksifikasyon ajanlarının durumu. casp 3, casp 9, p53 ve Bcl-2'nin geri yüklenen aktivite seviyeleri.
        [ 111 ]
        DMH kaynaklı kolon kanseri (Erkek Wistar sıçanları) 2.5, 5 ve 10 mg/kg RA (4 hafta) ↓ DMH kaynaklı anormal kript odakları, polip sayısı, oksidatif stres, antioksidan durum, CYP450 içeriği ve PNPH aktivitesi belirteçlerini tersine çevirdi [ 112 ]
        Beş aylık Suriye hamsteri 1.3 mg/mL RA (2 hafta) ön tedavi ↓ tümör insidansı
        ↑ farklılaşma
        ↓ tümör invazyonu ön derecelendirme sisteminde puanlar.
        [ 113 ]
        5 haftalık erkek çıplak Balb/c fareleri deri altından MKN45 hücreleri ile yanlarına inkübe edildi. Günlük çölyak enjeksiyonu yoluyla 2 mg/kg RA (14 gün) ↓ Warburg etkisi ↓ glikoz alımı [ 114 ]
        DMH kaynaklı kolon kanseri (Erkek Wistar sıçanları) 5 mg/kg RA oral (30 hafta) ↓ DMH kaynaklı kolon tümörü oluşumu ↓ TNF-α
        ↓ IL-6
        ↓ COX2
        [ 96 ]
        Ayrı bir pencerede aç
        TPA (12 - O -tetradekanoilfeorbol-13-asetat), COX2 (siklooksijenaz 2), DMBA (7,12-dimetilbenz(a)antrasen), DMH (1,2-dimetilhidrazin), p53 (tümör proteini p53), kasp ( kaspaz), Bcl-2 (B-hücresi KLL/lenfoma 2), CYP450 (sitokrom p450), GST (Glutatyon S -transferaz), GR (glukokortikoid reseptörü), GSH (glutatyon), PNPH (p-nitrofenol hidroksilaz), TNF -α (tümör nekroz faktörü alfa), IL-6 (interlökin-6).

        Git: 10. Dozaj ve Biyoyararlanım

        RE'nin etkileri birçok kanser hücre hattında incelenmiştir ve in vitro çalışmalarda kullanılan konsantrasyonlar değişken olmasına rağmen (0,1–500 μg/mL), 0,1–100 μg/mL aralığındaki konsantrasyonların en etkili olduğu görülmektedir. . İn vitro çalışmalara benzer şekilde, in vivo kullanılan rapor edilen RE dozları geniş bir aralıktadır (1 mg/mL içme suyu -3333.3 mg/kg/gün). Bu yüksek değişkenlik, in vivo olarak etkili RE dozlarını belirlemek için daha sistematik çalışmalara ihtiyaç olduğunu göstermektedir. Bir çalışma, RE ile uygulanan hayvanların plazma ve doku örneklerindeki RE bileşenlerinin seviyelerini incelemiştir. CA ile zenginleştirilmiş tek doz RE (100 mg/mL su) uygulaması (%40 w / w) sıçanlarda intragastrik gavaj ile plazma, karaciğer, ince bağırsak içeriği ve beyindeki RE bileşikleri ve metabolitlerinin ölçümleri takip edildi. Araştırmacılar geçici olarak 26 bileşik tanımladılar ve plazma, karaciğer ve bağırsakta tespit edilen ana metabolitler CA, karnosol ve rosmanolün glukuronid konjugatlarıydı [ 115 ]. Metabolitler, oral uygulamadan 25 dakika sonra saptandı ve bileşiklerin çoğu, birkaç saat boyunca önemli konsantrasyonlarda (mikromolar aralık) mevcut kaldı [ 115 ]. Doolaege, et al. sıçanlara oral yoldan uygulanan 64.3 mg/kg (193.43 mM) CA'nın 0.015 mg/mL (45.12 μM) plazma konsantrasyonu ile sonuçlandığını bildirmiştir [ 116]. Başka bir çalışma, 8 hafta sonra 360 mg/kg/gün RA'nın yutulmasının 1.1 μM'lik bir plazma konsantrasyonu ile sonuçlandığını bildirdi [117 ]. CA, karnosol ve metabolitlerinin rapor edilen plazma konsantrasyonları, emilim ve biyoyararlanımın RE'nin bu bileşenleri için büyük olasılıkla engel olmadığını gösteren mikromolar aralıktaydı [ 114 , 115 , 118 ].

        İyi tasarlanmış çalışmalarda sistematik olarak incelenmesi gereken bir diğer önemli konu, RE ve RE polifenollerinin kronik uygulamasının potansiyel toksisitesidir. Biberiye özü, Avrupa Gıda ve Güvenlik Otoritesi (EFSA) [ 119 tarafından güvenli bir gıda katkı maddesi olarak zaten onaylanmıştır . ve Amerika Birleşik Devletleri Gıda ve İlaç Dairesi (FDA) (21CFR182.10) tarafından genel olarak güvenli olarak kabul edilmektedir. EFSA tarafından gözden geçirilen bir çalışmada, biberiyenin sıçanlarda düşük akut ve subkronik toksisiteye sahip olduğu ve yüksek dozlardaki tek etkinin, geri dönüşümlü olduğu gösterilen nispi karaciğer ağırlığında hafif bir artış olduğu bulundu. Genel olarak, sıçanlarda 90 günlük RE uygulaması (180–400 mg/kg/gün, 20–60 mg/kg/gün karnosol artı CA'ya eşdeğer), gözlenen herhangi bir yan etki düzeyi (NOAEL) ortaya çıkarmadı (['de gözden geçirilmiştir].119 ]). Ayrıca, dişi ve erkek farelere sırasıyla 24 ve 28.5 g/kg'lık akut tek doz veya 5 gün boyunca sırasıyla dişi ve erkek farelere sırasıyla 11.8 ve 14.1 g/kg'lık günlük uygulama, otopside hiçbir brüt makroskopik lezyon gözlenmedi. ekstrenin tekrar tekrar uygulanmasına maruz kalan farelerde yağlı karaciğer, düşük akut toksisiteyi gösterir ([ 119 ]'da gözden geçirilmiştir). Başka bir çalışmada, Lewis akciğer karsinomu hücreleri implante edilen farelerde 169.9 mg/kg/gün RA'lık bir LD50'nin bulunduğu bildirilmiştir [ 90 ].]. İnsanlarda yapılan bir çalışmada, 3 ay boyunca günlük olarak (250 mg) tüketilen narenciye özütü (1:1 oranında) (Nutroxsun™) ile karıştırılmış toz halinde bir RE kullanılmıştır. Sonuçlar, UV kaynaklı cilt hasarına karşı koruyucu bir etki gösterdi. Önemli sonuçlar 8 hafta sonra görüldü ve 85 günlük tedaviden sonra artmaya devam etti [ 120 ]. Genel olarak, sınırlı in vivo çalışmalar, nispeten yüksek olan ve minimum yan etki gösteren veya hiç yan etki göstermeyen, düşük toksisite gösteren RE veya RE bileşenlerinin dozlarını bildirmektedir. Bununla birlikte, önerilen maksimum RE ve RE bileşenleri dozlarını doğrulamak için daha fazla araştırma yapılmalıdır.

        İnsanlarda, sağlık yararları sağlayacak RE polifenol seviyelerine ulaşmak için, pratik olmayan, yüksek biberiye alımı gerekli olacaktır. RE ve polifenollerinin antikanser ajanlar olarak gelecekteki potansiyel kullanımı için daha makul bir yön, RE veya RE bileşenleri içeren kolayca sindirilebilir ve çözünür haplar geliştirmek olacaktır. Genel olarak, mevcut çalışmalar RE ve polifenolleri CA ve RA'nın ilaç geliştirme için iyi adaylar olduğunu ve insanlarda herhangi bir klinik çalışma başlatılmadan önce hayvanlarda etkili dozları inceleyen daha fazla araştırma yapılması gerektiğini önermektedir. Ek olarak, klinik insan çalışmalarından önce kronik uygulamanın herhangi bir toksisiteye yol açıp açmadığını incelemek için hayvanlarda sistematik çalışmalar gereklidir.

        Son yıllarda bilim adamlarının, bağırsak mikrobiyotasının genel sağlık ve hastalıkların önlenmesinde önemli bir rol oynadığını kabul ettiği belirtilmelidir. Bazı bitki biyoaktif bileşikleri biyoyararlanımı zayıf olsa da, bağırsak bakterileri, ana bileşiklerden daha güçlü metabolitler üretebilir. Yakın zamanda yapılan bir çalışma, sıçanlarda CA'dan zengin (%40 a / a ) RE uygulamasının çekum mikrobiyotası üzerinde seçici bir etkiye sahip olduğunu (Blautia coccoides ve Bacteroides/Prevotella gruplarını artırdığını ve Lactobacillus/Leuconostoc/Pediococccus grubunu azalttığını), β'yı azalttığını buldu. -glukozidaz aktivitesi ve artan lif fekal eliminasyonu [ 121]. Bu veriler, RE ile görülen azalmış vücut ağırlığı ve metabolik ve inflamatuar durumun iyileşmesi ile ilişkilidir [ 121 ]. Yukarıdaki çalışma, RE uygulamasının metabolik bozukluklara ve obeziteye karşı potansiyel bir prebiyotik etkisi olduğunu öne sürse de, bağırsak mikrobiyotasının RE metabolitleri üzerindeki etkisini spesifik olarak inceleyen hiçbir çalışma yoktur.

        Git: 11. Sonuçlar

        RE'de bulunan polifenollerin ve biyoaktif bileşiklerin seviyelerinin, bitki yetiştirme koşulları (toprak, iklim, stres faktörlerine maruz kalma) gibi birçok faktörden etkilenebileceği belirtilmelidir. Ek olarak, RE'nin ekstraksiyon yöntemi ve depolanması, potensini etkileyebilir. Su, metanol, etanol ve süper kritik karbon dioksit ekstraksiyonu, farklı çalışmalarda kullanılan yöntemlerdir ve kanıtlar metanol (alkollü-çözücü) ekstraksiyonunun daha yüksek potensli (düşük IC50) RE'ye yol açabileceğini düşündürmektedir [ 31 ]. RE'nin kaynağı ve ekstraksiyon yöntemi, potensini/biyolojik aktivitesini etkileyebileceğinden, gelecekteki çalışmalar planlanırken bu konu dikkate alınmalıdır.

        Son yıllarda odak, kanserde sıklıkla mutasyona uğrayan spesifik yolları modüle edebilen yeni hedefli kanser tedavileri oluşturmaya doğru kaymıştır. RE ve polifenolleri CA ve RA, apoptozun indüklenmesine ve hücre sağkalımının azalmasına yol açan spesifik yolları hedeflemek için kimyasallar olarak kullanılabilir. Ek olarak, RE, CA ve RA, mevcut kemoterapötiklerin antikanser etkilerini arttırmak için nötrasötikler olarak kullanılabilir. Bu, daha düşük dozların kullanılmasına ve sağlıklı çevre dokuda daha az toksisitenin indüklenmesine izin verebilir. RE, CA ve RA tarafından hedeflenen sinyal moleküllerini ve yollarını inceleyen çalışmalar sınırlı olsa da, mevcut çalışmalar bu bileşiklerin hem kendi başlarına hem de diğer kanser tedavileriyle kombinasyon halinde kullanımına ilişkin destekleyici kanıtlar sunmaktadır.

        Genel olarak, RE, CA ve RA'nın çeşitli güçlü ve etkili antikanser özelliklerine sahip olduğu gösterilmiştir. Bununla birlikte, insan çalışmaları başlatılmadan önce hayvanlarda daha sistematik çalışmalara ihtiyaç vardır. İn vivo hayvan çalışmaları (1) uygulanacak dozları; (2) en iyi uygulama yolu; (3) CA, RA ve diğer RE biyoaktif bileşenlerinin plazma seviyeleri; (4) etkilenen sinyal molekülleri/yolları; ve (5) kronik uygulama ile bağlantılı olası toksik etkiler.

        Git: Teşekkür

        Bu çalışma kısmen ET'ye bir Brock Üniversitesi Geliştirme Fonu (BUAF) hibesi ile desteklenmiştir.

        Git: Yazar Katkıları

        JM ve ET inceleme konusunu formüle etti, makaleyi yazdı ve makaleyi gözden geçirdi. MY, makalenin yazılmasına ve gözden geçirilmesine katkıda bulundu. Tüm yazarlar son makaleyi okudu ve onayladı.

        Git: Çıkar çatışmaları

        Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

        Git: Referanslar

        1. Hanahan D., Weinberg RA Kanserin İşaretleri: Yeni Nesil. Hücre. 2011; 144 :646-674. doi: 10.1016/j.cell.2011.02.013. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        2. Bhowmick NA, Neilson EG, Moses HL Kanser başlangıcında ve ilerlemesinde stromal fibroblastlar. Doğa. 2004; 432 :332–337. doi: 10.1038/nature03096. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        3. Cheng N., Chytil A., Shyr Y., Joly A., Moses HL Dönüştürücü Büyüme Faktörü-β Sinyali Eksik Fibroblastlar, Saçılma ve İstilayı Teşvik Etmek için Meme Karsinomu Hücrelerinde Hepatosit Büyüme Faktörü Sinyalini Artırır. Mol. Kanser Araş. 2008; 6 :1521–1533. doi: 10.1158/1541-7786.MCR-07-2203. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        4. Da Rocha AB, Lopes RM, Schwartsmann G. Antikanser tedavisinde doğal ürünler. Kör. Görüş. farmakol. 2001; 1 :364–369. doi: 10.1016/S1471-4892(01)00063-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        5. Storozhuk Y., Hopmans SN, Şanlı T., Barron C., Tsiani E., Cutz J.-C., Pond G., Wright J., Singh G., Tsakiridis T. Metformin büyümeyi engeller ve radyasyon tepkisini artırır ATM ve AMPK aracılığıyla küçük hücreli olmayan akciğer kanserinin (KHDAK) Br. J. Kanser. 2013; 108 :2021–2032. doi: 10.1038/bjc.2013.187. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        6. Bai Y., Mao Q.-Q., Qin J., Zheng X.-Y., Wang Y.-B., Yang K., Shen H.-F., Xie L.-P. Resveratrol, insan T24 mesane kanseri hücrelerinin apoptozu ve hücre döngüsü durdurmasını in vitro indükler ve in vivo olarak tümör büyümesini inhibe eder. Kanser Bilimi. 2010; 101 :488-493. doi: 10.1111/j.1349-7006.2009.01415.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        7. Rashid A., Liu C., Sanli T., Tsiani E., Singh G., Bristow RG, Dayes I., Lukka H., Wright J., Tsakiridis T. Resveratrol, prostat kanseri hücresinin iyonlaştırıcı radyasyona tepkisini arttırır. AMPK, Akt ve mTOR yollarının modülasyonu. Radyasyon. Onkol. 2011; 6 :144. doi: 10.1186/1748-717X-6-144. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        8. Varoni EM, Lo Faro AF, Sharifi-Rad J., Iriti M. Resveratrol'ün Antikanser Moleküler Mekanizmaları. Ön. Nutr. 2016; 3 doi: 10.3389/fnut.2016.00008. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        9. Aggarwal BB, Bhardwaj A., Aggarwal RS, Seeram NP, Shishodia S., Takada Y. Resveratrol'ün Kanserin Önlenmesi ve Tedavisinde Rolü: Preklinik ve Klinik Çalışmalar. Antikanser Araş. 2004; 24 :2783–2840. [ PubMed ] [ Google Akademik ]
        10. Barron CC, Moore J., Tsakiridis T., Pickering G., Tsiani E. Şarapla insan akciğer kanseri hücre çoğalmasının ve hayatta kalmasının engellenmesi. Kanser Hücresi İnt. 2014; 14 :6. doi: 10.1186/1475-2867-14-6. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        11. Cuvelier ME, Berset C., Richard H. Adaçayı ( Salvia officinalis ) J. Agric'te Antioksidan Bileşenler. Gıda Kimyası 1994; 42 :665–669. doi: 10.1021/jf00039a012. [ CrossRef ] [ Google Akademik ]
        12. González-Vallinas M., Reglero G., Ramírez de Molina A. Biberiye ( Rosmarinus officinalis L.) Antikanser Tedavisinde Potansiyel Tamamlayıcı Ajan olarak Özü. Nutr. Kanser. 2015; 67 :1221–1229. doi: 10.1080/01635581.2015.1082110. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        13. Petiwala SM, Puthenveetil AG, Johnson JJ Akdeniz bitki biberiyesinden ( Rosmarinus officinalis ) prostat kanseri için polifenoller. Ön. farmakol. 2013; 4 :e1–e4. doi: 10.3389/fphar.2013.00029. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        14. Petiwala SM, Johnson JJ Biberiyeden Diterpenes ( Rosmarinus officinalis ): Kansere karşı aktivite potansiyellerini tanımlama. Kanser Let. 2015; 367 :93–102. doi: 10.1016/j.canlet.2015.07.005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        15. Slamenova D., Kuboskova K., Horvathova E., Robichova S. H202 veya görünür ışıkla uyarılmış Metilen Mavisi ile tedavi edilen memeli hücrelerinde DNA zincir kırıklarının ve FPG'ye duyarlı bölgelerin biberiye ile uyarılmış azalması . Kanser Let. 2002; 177 :145–153. doi: 10.1016/S0304-3835(01)00784-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        16. Yi W., Wetzstein HY Sera koşullarında yetiştirilen beş mutfak ve şifalı bitkinin anti-tümörojenik aktivitesi ve bunların kombinasyon etkileri. J. Sci. Gıda Tarımı. 2011; 91 :1849–1854. doi: 10.1002/jsfa.4394. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        17. Ibáñez C., Simó C., García-Cañas V., Gómez-Martínez Á., Ferragut JA, Cifuentes A. Diyet polifenollerinin kolon kanseri hücrelerinin proliferasyonu üzerindeki etkisinin geniş metabolomik analizi için CE/LC-MS çoklu platformu. Elektroforez. 2012; 33 :2328–2336. doi: 10.1002/elps.201200143. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        18. Đilas S., Knez Ž., Četojević-Simin D., Tumbas V., Škerget M., Čanadanović-Brunet J., Ćetković G. Üç biberiye ( Rosmarinus officinalis L.) özütü formülasyonunun in vitro antioksidan ve antiproliferatif aktivitesi . Int. J. Gıda Bilimi. Teknoloji. 2012; 47 :2052–2062. doi: 10.1111/j.1365-2621.2012.03069.x. [ CrossRef ] [ Google Akademik ]
        19. Valdés A., Garcia-Canas V., Rocamora-Reverte L., Gomez-Martinez A., Ferragut JA, Cifuentes A. Biberiye polifenollerinin insan kolon kanseri hücreleri üzerindeki etkisi: Transkriptomik profil oluşturma ve fonksiyonel zenginleştirme analizi. Genler Nutr. 2013; 8 :43-60. doi: 10.1007/s12263-012-0311-9. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        20. González-Vallinas M., Molina S., Vicente G., de la Cueva A., Vargas T., Santoyo S., García-Risco MR, Fornari T., Reglero G., Ramírez de Molina A. Antitümör etkisi 5-fluorourasil, hem ilaca duyarlı hem de dirençli kolon kanseri hücrelerinde biberiye özü ile geliştirilmiştir. farmakol. Araş. 2013; 72 :61-68. doi: 10.1016/j.phrs.2013.03.010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        21. González-Vallinas M., Molina S., Vicente G., Zarza V., Martín-Hernández R., García-Risco MR, Fornari T., Reglero G., de Molina AR Expression of MicroRNA-15b and the Glycosyltransferase GCNT3, Biberiye Diterpenlerinin Kolon ve Pankreas Kanserinde Antitümör Etkinliği ile İlişkilidir. PLoS BİR. 2014; 9 :e98556. doi: 10.1371/journal.pone.0098556. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        22. Borrás-Linares I., Pérez-Sánchez A., Lozano-Sánchez J., Barrajón-Catalán E., Arráez-Román D., Cifuentes A., Micol V., Carretero AS Aktif bileşiklerin biyolojik olarak yönlendirilmiş bir tanımlaması. Biberiye ekstraktının kolon kanseri hücreleri üzerindeki antiproliferatif/sitotoksik etkilerine katkıda bulunur. Gıda Kimyası Toksikol. Int. J. Yayın Br. Ind. Biol. Araş. Doç. 2015; 80 :215–222. doi: 10.1016/j.fct.2015.03.013. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        23. Yan M., Li G., Petiwala SM, Householter E., Johnson JJ Standardize biberiye ( Rosmarinus officinalis ) özütü, kolon kanseri hücrelerinde Nrf2/sestrin-2 yolunu indükler. J. Fonksiyon. yiyecekler. 2015; 13 :137–147. doi: 10.1016/j.jff.2014.12.038. [ CrossRef ] [ Google Akademik ]
        24. Valdés A., Sullini G., Ibáñez E., Cifuentes A., García-Cañas V. Biberiye polifenolleri, kolon kanseri hücrelerinde katlanmamış protein tepkisini ve kolesterol metabolizmasındaki değişiklikleri indükler. J. Fonksiyon. yiyecekler. 2015; 15 :429–439. doi: 10.1016/j.jff.2015.03.043. [ CrossRef ] [ Google Akademik ]
        25. Valdés A., García-Cañas V., Koçak E., Simó C., Cifuentes A. Biberiye polifenolleri tarafından hücre dışı hidrojen peroksit üretiminin, biberiye polifenollerinin HT-29'a karşı anti-proliferatif aktivitesi üzerindeki etkileri üzerine Foodomik çalışma hücreler. Elektroforez. 2016; 37 :1795–1804. doi: 10.1002/elps.201600014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        26. Valdés A., Artemenko KA, Bergquist J., García-Cañas V., Cifuentes A. Nanoliquid Chromatography-Orbitrap MS/MS Kullanılarak Kolon Kanseri Hücreleri Üzerinde Polifenolle Zenginleştirilmiş Biberiye Ekstraktının Antiproliferatif Aktivitesinin Kapsamlı Proteomik Çalışması. J. Proteom Araş. 2016; 15 :1971–1985. doi: 10.1021/acs.jproteome.6b00154. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        27. Kontogianni VG, Tomic G., Nikolic I., Nerantzaki AA, Sayyad N., Stosic-Grujicic S., Stojanovic I., Gerothanassis IP, Tzakos AG Rosmarinus officinalis ve Salvia officinalis ekstraktlarının fitokimyasal profili ve antioksidanları ile korelasyonu ve anti-proliferatif aktivite. Gıda Kimyası 2013; 136 :120–129. doi: 10.1016/j.foodchem.2012.07.091. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        28. Alexandrov K., Rojas M., Rolando C. İnsan hücrelerinde benzo(a)pirenin DNA hasarı sigara dumanı ile artar ve serbest radikalleri azaltan biberiye özü içeren bir filtre ile azalır. Kanser Araş. 2006; 66 :11938–11945. doi: 10.1158/0008-5472.CAN-06-3277. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        29. Cheung S., Tai J. Biberiye Rosmarinus officinalis'in anti-proliferatif ve antioksidan özellikleri . Onkol. 2007 ; 17 :1525–1531. doi: 10.3892/veya.17.6.1525. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        30. Yeşil-Çeliktaş O., Sevimli C., Bedir E., Vardar-Sukan F. Biberiye Ekstraktları, Karnosik Asit ve Rosmarinik Asit'in Çeşitli İnsan Kanser Hücre Hatlarının Büyümesi Üzerindeki İnhibitör Etkileri. Bitki Besinleri Hum. Nutr. 2010; 65 :158-163. doi: 10.1007/s11130-010-0166-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        31. Mothana RAA, Kriegisch S., Harms M., Wende K., Lindequist U. Seçilen Yemen tıbbi bitkilerinin in vitro antimikrobiyal, antikanser ve antioksidan aktiviteleri açısından değerlendirilmesi. Eczacılık Biol. 2011; 49 :200–210. doi: 10.3109/13880209.2010.512295. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        32. González-Vallinas M., Molina S., Vicente G., Sánchez-Martínez R., Vargas T., García-Risco MR, Fornari T., Reglero G., Ramírez de Molina A. Modülasyon östrojen ve epidermal büyüme meme kanseri hücrelerinde biberiye özü ile faktör reseptörleri. Elektroforez. 2014; 35 :1719–1727. doi: 10.1002/elps.201400011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        33. Petiwala SM, Berhe S., Li G., Puthenveetil AG, Rahman O., Nonn L., Johnson JJ Rosemary ( Rosmarinus officinalis ) Ekstresi, Androjen Reseptör Bozulmasını Teşvik Etmek ve Ksenogreft Tümör Büyümesini Azaltmak için CHOP/GADD153'ü Modüle eder. PLoS BİR. 2014; 9 :e89772. doi: 10.1371/journal.pone.0089772. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        34. Tai J., Cheung S., Wu M., Hasman D. Biberiyenin ( Rosmarinus officinalis ) insan yumurtalık kanseri hücreleri üzerindeki in vitro antiproliferasyon etkisi. Bitkisel ilaç. 2012; 19 :436–443. doi: 10.1016/j.phymed.2011.12.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        35. Berrington D., Lall N. Bazı Bitkiler ve Baharatların Servikal Epitelyal Karsinom (HeLa) Hücre Çizgisi Üzerindeki Antikanser Aktivitesi. Kötü. Temelli Tamamlayıcı. alternatif. Med. 2012; 2012 : e564927. doi: 10.1155/2012/564927. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        36. Wang W., Li N., Luo M., Zu Y., Efferth T. Rosmarinus officinalis L. Esansiyel Yağının Ana Bileşenlerine Göre Antibakteriyel Aktivitesi ve Antikanser Aktivitesi . Moleküller. 2012; 17 :2704–2713. doi: 10.3390/moleküller17032704. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        37. Peng C.-H., Su J.-D., Chyau C.-C., Sung T.-Y., Ho S.-S., Peng C.-C., Peng RY Supercritical Fluid Extracts of Biberiye Yaprakları, Güçlü Anti-İnflamasyon ve Anti-Tümör Etkileri Sergiler. Biosci. Biyoteknoloji. Biyokimya. 2007; 71 :2223–2232. doi: 10.1271/bbb.70199. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        38. Vicente G., Molina S., González-Vallinas M., García-Risco MR, Fornari T., Reglero G., de Molina AR Süperkritik biberiye özleri, antioksidan aktiviteleri ve hepatik tümör ilerlemesi üzerindeki etkisi. J. Supercrit. sıvılar 2013; 79 :101–108. doi: 10.1016/j.supflu.2012.07.006. [ CrossRef ] [ Google Akademik ]
        39. Moore J., Megaly M., MacNeil AJ, Klentrou P., Tsiani E. Biberiye özütü, Akt/mTOR/p70S6K aktivasyonunu azaltır ve A549 insan akciğer kanseri hücrelerinin çoğalmasını ve hayatta kalmasını engeller. Biyomedya. Eczacı. 2016; 83 :725–732. doi: 10.1016/j.biopha.2016.07.043. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        40. Shabtay A., Sharabani H., Barvish Z., Kafka M., Amichay D., Levy J., Sharoni Y., Uskokovic MR, Studzinski GP, Danilenko M. Karnosik Asitten Zengin Biberiye Ekstraktının Sinerjistik Antilösemik Aktivitesi ve Sistemik Akut Miyeloid Löseminin Fare Modelinde 19-nor İkizler D Vitamini Analoğu. Onkoloji. 2008; 75 :203–214. doi: 10.1159/000163849. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        41. Sharabani H., Izumchenko E., Wang Q., Kreinin R., Steiner M., Barvish Z., Kafka M., Sharoni Y., Levy J., Uskokovic M., et al. Bir miyeloid lösemi fare modelinde D3 vitamini türevlerinin ve biberiye preparatlarının kooperatif antitümör etkileri. Int. J. Kanser. 2006; 118 :3012–3021. doi: 10.1002/ijc.21736. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        42. Okumura N., Yoshida H., Nishimura Y., Kitagishi Y., Matsuda S. Terpinolene, bitkisel adaçayı bileşeni, K562 hücrelerinde AKT1 ekspresyonunu azaltır. Onkol. Lett. 2012; 3 :321–324. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        43. Ahmad HH, Hamza AH, Hassan AZ, Sayed AH Rosmarinus officinalis'in ardışık metanolik fraksiyonunun kolorektal kansere karşı umut verici terapötik rolü . Int. J. Ecz. Eczacılık bilim 2013; 5 :164–170. [ Google Akademik ]
        44. Kitano M., Wanibuchi H., Kikuzaki H., Nakatani N., Imaoka S., Funae Y., Hayashi S., Fukushima S. Biberden kumarperinin sıçanlarda kimyasal hepatokarsinojenezin başlama aşaması üzerindeki kemopreventif etkileri. Jpn. J. Kanser Araş. Ganne. 2000; 91 :674-680. doi: 10.1111/j.1349-7006.2000.tb00998.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        45. Soyal D., Jindal A., Singh I., Goyal PK Farelerde radyasyona bağlı biyokimyasal değişikliklerin biberiye ( Rosemarinus officinalis ) özü ile modülasyonu. Bitkisel. Int. J. Fitoter. Fitofarm. 2007; 14 :701–705. doi: 10.1016/j.phymed.2006.12.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        46. ​​Sancheti G., Goyal P. Rosemarinus officinalis'in DMBA ile indüklenen fare derisi tümörijenezi üzerindeki modülatör etkisi . Asya Pak. J. Kanser Önceki. 2006; 7 :331–335. [ PubMed ] [ Google Akademik ]
        47. Sancheti G., Rosmarinus officinalis'in farelerde 7,12-dimetilbenz(a)antrasen ile indüklenen deri tümör oluşumunu modüle etmede Goyal PK Etkisi. bitki Araş. 2006; 20 :981–986. doi: 10.1002/ptr.1989. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        48. Visanji JM, Thompson DG, Padfield PJ Karnosol ve karnosik asit tarafından G2/M fazı hücre döngüsü durdurmasının indüksiyonu, siklin A ve siklin B1 seviyelerinin değiştirilmesi ile ilişkilidir. Kanser Let. 2006; 237 :130–136. doi: 10.1016/j.canlet.2005.05.045. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        49. Barni MV, Carlini MJ, Cafferata EG, Puricelli L., Moreno S. Karnosik asit, insan kolorektal kanser hücrelerinin çoğalma ve göç kapasitesini engeller. Onkol. 2012 ; 27 :1041–1048. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        50. De la Roche M., Rutherford TJ, Gupta D., Veprintsev DB, Saxty B., Freund SM, Bienz M. β-katenin'in BCL9-bağlama bölgesine bitişik, özünde kararsız bir a-heliks tarafından inhibisyonu için gereklidir. karnosik asit. Nat. Komün. 2012; 3 :680. doi: 10.1038/ncomms1680. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        51. Valdés A., García-Cañas V., Simó C., Ibáñez C., Micol V., Ferragut JA, Cifuentes A. Bireysel Biberiye Polifenollerine Tepki olarak Kanser Hücrelerinde Çeşitli Moleküler Düzeylerde Çalışan Mekanizmalar Üzerine Kapsamlı Gıda Bilimi Çalışması . Anal. Kimya 2014; 86 :9807–9815. doi: 10.1021/ac502401j. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        52. Kim Y.-J., Kim J.-S., Seo Y.-R., Park J.-HY, Choi M.-S., Sung M.-K. Karnosik asit, anti-adipojenik aktivite ile bağlantılı olarak kolon tümörü oluşumunu baskılar. Mol. Nutr. Gıda Araş. 2014; 58 :2274–2285. doi: 10.1002/mnfr.201400293. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        53. Kim D.-H., Park K.-W., Chae IG, Kundu J., Kim E.-H., Kundu JK, Chun K.-S. Karnosik asit, STAT3 sinyalini inhibe eder ve insan kolon kanseri HCT116 hücrelerinde ROS üretimi yoluyla apoptozu indükler. Mol. kanserojen. 2016; 55 :1096-1110. doi: 10.1002/mc.22353. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        54. Einbond LS, Wu H., Kashiwazaki R., He K., Roller M., Su T., Wang X., Goldsberry S. Karnosik asit, ER-negatif insan meme kanseri hücrelerinin büyümesini engeller ve kurkumin ile sinerji oluşturur. Fitoterapi. 2012; 83 :1160–1168. doi: 10.1016/j.fitote.2012.07.006. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        55. Min K.-J., Jung K.-J., Kwon TK Karnosik Asit, İnsan Renal Karsinomu Caki Hücrelerinde Reaktif Oksijen Türlerinin aracılık ettiği Endoplazmik Retikulum Stres İndüksiyonu Yoluyla Apoptozu İndükler. J. Kanser Önceki. 2014; 19 :170–178. doi: 10.15430/JCP.2014.19.3.170. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        56. Jung K.-J., Min K., Bae JH, Kwon TK Karnosik asit, translasyon sonrası seviyelerde c-FLIP ve Bcl-2 ekspresyonunun aşağı regülasyonu ve CHOP'a bağlı yukarı regülasyonu yoluyla TRAIL aracılı apoptozu hassaslaştırdı insan karsinoma caki hücrelerinde DR5, Bim ve PUMA ekspresyonunun incelenmesi. Oncotarget. 2015; 6 :1556–1568. doi: 10.18632/oncotarget.2727. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        57. Linnewiel-Hermoni K., Khanin M., Danilenko M., Zango G., Amosi Y., Levy J., Sharoni Y. Karotenoidlerin ve diğer bitkisel besinlerin anti-kanser etkileri, bunların birleşik aktivitelerinde yatmaktadır. Kemer Biyokimya. Biyofiz. 2015; 572 :28–35. doi: 10.1016/j.abb.2015.02.018. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        58. Kar S., Palit S., Ball WB, Das PK Karnosik asit, PP2A tarafından Akt/IKK/NF-KB sinyalini modüle eder ve insan prostat karsinomu PC-3 hücrelerinde içsel ve dışsal yol aracılı apoptozu indükler. Apoptoz İnt. J. Programı. Hücre ölümü. 2012; 17 :735–747. doi: 10.1007/s10495-012-0715-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        59. Gao Q., Liu H., Yao Y., Geng L., Zhang X., Jiang L., Shi B., Yang F. Karnosik asit, insan hepatomunda Akt/mTOR yolunun inhibisyonu yoluyla otofajik hücre ölümünü indükler hücreler. J. Uygulama Toksikol. 2014:485–492. doi: 10.1002/jat.3049. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        60. Lin C.-Y., Wu C.-R., Chang S.-W., Wang Y.-J., Wu J.-J., Tsai C.-W. p38/Nrf2 yolu yoluyla sıçan Klon 9 hücrelerinde karnosik asit ile glutatyon S-transferazın pi sınıfının uyarılması. Gıda Fonksiyonu. 2015; 6 :1936–1943. doi: 10.1039/C4FO01131G. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        61. Tsai C.-W., Lin C.-Y., Wang Y.-J. Karnosik asit, p38/nükleer faktör eritroid-2 ile ilişkili faktör 2 yolu yoluyla sıçan klon 9 hücrelerinde NAD(P)H: Quinon oksidoredüktaz 1 ekspresyonunu indükler. J. Nutr. 2011; 141 :2119–2125. doi: 10.3945/jn.111.146779. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        62. López-Jiménez A., García-Caballero M., Medina M.Á., Quesada AR Biberiyeden elde edilen iki ana diyet bileşiği olan karnosol ve karnosik asidin anti-anjiyogenik özellikleri. Avro. J. Nutr. 2013; 52 :85-95. doi: 10.1007/s00394-011-0289-x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        63. Park SY, Song H., Sung M.-K., Kang Y.-H., Lee KW, Park JHY Karnosik Asit, B16F10 Melanom Hücrelerinde Epitelyal-Mezenkimal Geçişi Engeller: Hücre Göçünün Engellenmesi için Olası Bir Mekanizma . Int. J. Mol. bilim 2014; 15 :12698–12713. doi: 10.3390/ijms150712698. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        64. Kosaka K., Yokoi T. Biberiyenin bir bileşeni olan karnosik asit ( Rosmarinus officinalis L.), T98G insan glioblastoma hücrelerinde sinir büyüme faktörünün sentezini destekler. Biol. Eczacılık Boğa. 2003; 26 :1620-1622. doi: 10.1248/bpb.26.1620. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        65. Mimura J., Kosaka K., Maruyama A., Satoh T., Harada N., Yoshida H., Satoh K., Yamamoto M., Itoh K. Nrf2, T98G glioblastoma hücrelerinde karnosik asit tarafından NGF mRNA indüksiyonunu düzenler ve normal insan astrositleri. J. Biochem. 2011; 150 :209–217. doi: 10.1093/jb/mvr065. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        66. Tsai C.-W., Lin C.-Y., Lin H.-H., Chen J.-H. Biberiye fenolik bir bileşik olan karnosik asit, insan nöroblastom IMR-32 hücrelerinde reaktif oksijen türlerinin aracılık ettiği p38 aktivasyonu yoluyla apoptozu indükler. Nörokimya. Araş. 2011; 36 :2442–2451. doi: 10.1007/s11064-011-0573-4. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        67. De Oliveira MR, Ferreira GC, Schuck PF, dal Bosco SM SH-SY5Y nöroblastom hücrelerinde karnosik asidin metilglioksal kaynaklı nörotoksisiteye karşı koruyucu etkilerinde PI3K/Akt/Nrf2 sinyal yolu için rol. Kimya Biol. Etkileşime girmek. 2015; 242 :396–406. doi: 10.1016/j.cbi.2015.11.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        68. Meng P., Yoshida H., Tanji K., Matsumiya T., Xing F., Hayakari R., Wang L., Tsuruga K., Tanaka H., Mimura J., et al. Karnosik asit, SH-SY5Y insan nöroblastom hücrelerinde amiloid-β 1-42 veya 1-43 tarafından indüklenen apoptozu hafifletir. Nörobilim. Araş. 2015; 94 :1–9. doi: 10.1016/j.neures.2014.12.003. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        69. Yoshida H., Meng P., Matsumiya T., Tanji K., Hayakari R., Xing F., Wang L., Tsuruga K., Tanaka H., Mimura J., et al. Karnosik asit, U373MG insan astrositom hücrelerinde bir a-sekretaz TACE/ADAM17'yi indükleyerek amiloid-β 1-42 ve 1-43 üretimini baskılar. Nörobilim. Araş. 2014; 79 :83-93. doi: 10.1016/j.neures.2013.11.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        70. Cortese K., Daga A., Monticone M., Tavella S., Stefanelli A., Aiello C., Bisio A., Bellese G., Castagnola P. Karnosik asit, birlikte Cyclin B1, RB ve SOX2'nin proteazomal bozulmasını indükler GBM hücrelerinde hücre büyümesi durması ve apoptoz ile. Bitkisel. Int. J. Fitoter. Fitofarm. 2016; 23 :679–685. doi: 10.1016/j.phymed.2016.03.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        71. Danilenko M., Wang X., Studzinski GP Karnosik asit ve diğer ajanlar tarafından başlatılan HL60-G hücrelerinin monositik farklılaşmasının desteklenmesi. J. Natl. Kanser Enst. 2001; 93 :1224–1233. doi: 10.1093/jnci/93.16.1224. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        72. Steiner M. Karnosik Asit, 1,25-Dihidroksivitamin Dsub3 ve Retinoik Asit Tarafından İndüklenen İnsan Lösemik Hücrelerinin Proliferasyonunu Engeller ve Farklılaşmasını Artırır. Nutr. Kanser. 2001; 41 :135–144. doi: 10.1080/01635581.2001.9680624. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        73. Danilenko M., Wang Q., Wang X., Levy J., Sharoni Y., Studzinski GP Karnosik asit, lösemi hücrelerinde 1alfa,25-dihidroksivitamin D3'ün antioksidan ve prodiferansiasyon etkilerini güçlendirir, ancak bazal seviyelerin yükselmesini desteklemez. hücre içi kalsiyum. Kanser Araş. 2003; 63 :1325-1332. [ PubMed ] [ Google Akademik ]
        74. Wang Q., Harrison JS, Uskokovic M., Kutner A., ​​Studzinski GP Miyeloid löseminin D vitamini farklılaşma tedavisinin çeviri çalışması: Bir p38 MAPK inhibitörü ve bir antioksidan ile kombinasyonun etkileri. Lösemi. 2005; 19 :1812–1817. doi: 10.1038/sj.leu.2403916. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        75. Chen-Deutsch X., Garay E., Zhang J., Harrison JS, Studzinski GP c-Jun N - terminal kinaz 2 (JNK2), D vitaminine dirençli insan miyeloid lösemi hücrelerinde JNK1 tarafından farklılaşma sinyalini antagonize eder. Leuk . Araş. 2009; 33 :1372-1378. doi: 10.1016/j.leukres.2009.03.003. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        76. Chen-Deutsch X., Studzinski GP Hematopoietik progenitör kinaz 1'in (HPK1) 1α,25-dihidroksivitamin D kaynaklı farklılaşmanın pozitif düzenleyicisi ve AML hücrelerinin hücre döngüsü durması ve vitamin D direncinin bir aracısı olarak ikili rolü. Hücre. Döngü Georget. Teksas 2012; 11 :1364-1373. doi: 10.4161/cc.19765. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        77. Bobilev I., Novik V., Levi I., Shpilberg O., Levy J., Sharoni Y., Studzinski GP, Danilenko M. Nrf2 transkripsiyon faktörü, akut miyeloid lösemi hücrelerinin miyeloid farklılaşmasının pozitif bir düzenleyicisidir. Kanser Biol. orada. 2011; 11 :317–329. doi: 10.4161/cbt.11.3.14098. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        78. Nachliely M., Sharony E., Kutner A., ​​Danilenko M. İnsan akut miyeloid lösemi hücrelerinde yüksek verimli farklılaşma indükleyicileri olarak bir bitki polifenol ile birleştirilmiş 1,25-dihidroksivitamin D2'nin yeni analogları. J. Steroid Biyokimya. Mol. Biol. 2016; 164 :59-65. doi: 10.1016/j.jsbmb.2015.09.014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        79. Nishimoto S., Suzuki T., Koike S., Yuan B., Takagi N., Ogasawara Y. Nrf2 aktivasyonu, artan glutatyon seviyeleri ve hücrelerden arsenik akışı yoluyla akut promyelositik lösemi hücrelerinde arsenik trioksitin sitotoksik etkilerini iyileştirir. Toksikol. Uygulama farmakol. 2016; 305 :161–168. doi: 10.1016/j.taap.2016.06.017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        80. Yu X.-N., Chen X.-L., Li H., Li X.-X., Li H.-Q., Jin W.-R. İnsan lösemik hücre hattında P-glikoprotein aracılı çoklu ilaç direncinin karnosik asit ile tersine çevrilmesi. Çene. J. Physiol. 2008; 51 :348–356. [ PubMed ] [ Google Akademik ]
        81. Duggal J., Harrison JS, Studzinski GP, Wang X. İnsan lösemi hücrelerinde bitki kaynaklı bir antioksidan karnosik asit ve D vitamini analogu dokserkalsiferol tarafından indüklenen farklılaşma ve hücre döngüsü durdurmada microRNA181a'nın katılımı. MicroRNA Shariqah. Birleşik Arap Emiri. 2012; 1 :26–33. doi: 10.2174/2211536611201010026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        82. Wang R., Cong W., Guo G., Li X., Chen X., Yu X., Li H. Karnosik asit ve arsenik trioksit arasındaki akut miyeloid lösemi hücre apoptozunun indüksiyonunda sinerjizm, PTEN modülasyonu ile ilişkilidir. /Akt sinyal yolu. Çene. J. Integr. Med. 2012; 18 :934-941. doi: 10.1007/s11655-012-1297-z. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        83. Manoharan S., Vasanthaselvan M., Silvan S., Baskaran N., Kumar Singh A., Vinoth Kumar V. Karnosik asit: Oral karsinojeneze karşı güçlü bir kemopreventif ajan. Kimya Biol. Etkileşime girmek. 2010; 188 :616-622. doi: 10.1016/j.cbi.2010.08.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        84. Rajasekaran D., Manoharan S., Silvan S., Vasudevan K., Baskaran N., Palanimuthu D. 7,12 dimetilbenz[a sırasında karnosik asidin proapoptotik, anti-hücre proliferatif, anti-inflamatuar ve anti-anjiyogenik potansiyeli ]antrasen kaynaklı hamster bukkal kese karsinojenezi. Afr. J. Gelenek. Tamamlayıcı. Alternatif. Med. AJTCAM Afr. ağ Etnom. 2012; 10 :102–112. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        85. Gómez-García F., López-Jornet M., Álvarez-Sánchez N., Castillo-Sánchez J., Benavente-García O., Vicente Ortega V. Fenolik bileşikler apigenin ve karnosik asidin hamsterda oral karsinojenez üzerindeki etkisi DMBA tarafından indüklenir. Oral Dis. 2013; 19 :279–286. doi: 10.1111/j.1601-0825.2012.011975.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        86. Petiwala SM, Li G., Bosland MC, Lantvit DD, Petukhov PA, Johnson JJ Karnosik asit, androjen reseptörünün bozulmasını teşvik eder ve in vitro ve in vivo olarak katlanmamış protein tepki yolu tarafından düzenlenir. Karsinojenez. 2016; 37 :827-838. doi: 10.1093/carcin/bgw052. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        87. Wang L.-Q., Wang R., Li X.-X., Yu X.-N., Chen X.-L., Li H. Karnosik asidin Adriamisin ile birleştirilmiş anti-lösemik etkisi K562/A02/SCID lösemi fare modeli. Int. J. Clin. Tecrübe. Med. 2015; 8 :11708–11717. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        88. Scheckel KA, Degner SC, Romagnolo DF Rosmarinik asit, insan kanserinde ve malign olmayan hücre dizilerinde siklooksijenaz-2 ekspresyonunun aktivatör protein-1'e bağlı aktivasyonunu antagonize eder. J. Nutr. 2008; 138 :2098–2105. doi: 10.3945/jn.108.090431. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        89. Xavier CPR, Lima CF, Fernandes-Ferreira M., Pereira-Wilson C. Salvia fruticosa , Salvia officinalis ve rosmarinic asit apoptozu indükler ve insan kolorektal hücre hatlarının çoğalmasını engeller: MAPK/ERK yolundaki rol. Nutr. Kanser. 2009; 61 :564-571. doi: 10.1080/01635580802710733. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        90. Xu Y., Xu G., Liu L., Xu D., Liu J. Ls174-T hücrelerinde hücre dışı sinyalle düzenlenen kinaz ve oksidasyon-redüksiyon yolu yoluyla rosmarinik asidin istila önleyici etkisi. J. Hücre. Biyokimya. 2010; 111 :370–379. doi: 10.1002/jcb.22708. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        91. Ramos AA, Pedro D., Collins AR, Pereira-Wilson C. Salvia ile koruma, insan HCT15 ve CO115 hücrelerinde DNA'ya oksidatif ve alkilasyon hasarına karşı özütler. J. Toksikol. Çevre. Sağlık A. 2012; 75 :765–775. doi: 10.1080/15287394.2012.689804. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        92. Moon D.-O., Kim M.-O., Lee J.-D., Choi YH, Kim G.-Y. Rosmarinik asit, insan lösemi U937 hücrelerinde TNF-a ile indüklenen NF-KB aktivasyonunun ve ROS oluşumunun baskılanması yoluyla hücre ölümünü hassaslaştırır. Kanser Let. 2010; 288 :183–191. doi: 10.1016/j.canlet.2009.06.033. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        93. Paluszczak J., Krajka-Kuźniak V., Baer-Dubowska W. Diyet polifenollerinin MCF7 meme kanseri hücrelerinde gen ekspresyonunun epigenetik düzenlenmesi üzerindeki etkisi. Toksikol. Lett. 2010; 192 :119–125. doi: 10.1016/j.toxlet.2009.10.010. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        94. Berdowska I., Zieliński B., Fecka I., Kulbacka J., Saczko J., Gamian A. Lamiaceae türlerinden fenoliklerin insan meme kanseri hücreleri üzerindeki sitotoksik etkisi. Gıda Kimyası 2013; 141 :1313-1321. doi: 10.1016/j.foodchem.2013.03.090. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        95. Li F.-R., Fu Y.-Y., Jiang D.-H., Wu Z., Zhou Y.-J., Guo L., Dong Z.-M., Wang Z.-Z . SGC7901/Adr hücresinde rosmarinik asidin çoklu ilaç direnci üzerindeki ters etkisi. J. Asya Nat. Ürün Araş. 2013; 15 :276–285. doi: 10.1080/10286020.2012.762910. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        96. Han S., Yang S., Cai Z., Pan D., Li Z., Huang Z., Zhang P., Zhu H., Lei L., Wang W. miR yoluyla rosmarinik asidin anti-Warburg etkisi -155 mide kanseri hücrelerinde. İlaç Des. geliştirici orada. 2015; 9 :2695–2703. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
        97. Lee J., Kim YS, Park D. Rosmarinic asit, protein kinaz A aktivasyon sinyali yoluyla melanogenezi indükler. Biyokimya. farmakol. 2007; 74 :960–968. doi: 10.1016/j.bcp.2007.06.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        98. Renzulli C., Galvano F., Pierdomenico L., Speroni E., Guerra MC Bir insan hepatoma hücre hattında (HepG2) J. Appl. Toksikol. 2004; 24 :289–296. doi: 10.1002/jat.982. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        99. Lin C.-S., Kuo C.-L., Wang J.-P., Cheng J.-S., Huang Z.-W., Chen C.-F. Perilla frutescens özütünün insan hepatoma HepG2 hücreleri üzerindeki büyüme önleyici ve apoptoz indükleyici etkisi . J. Etnofarmakol. 2007; 112 :557–567. doi: 10.1016/j.jep.2007.05.08. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        100. Wu J., Zhu Y., Li F., Zhang G., Shi J., Ou R., Tong Y., Liu Y., Liu L., Lu L., et al. Spica prunellae ve işaretleyici bileşiği rosmarinik asit, HepG2 hücrelerinde Nrf2 aracılı sinyal yolunun aktivasyonu yoluyla akış taşıyıcılarının ekspresyonunu indükledi. J. Etnofarmakol. 2016; 193 :1–11. doi: 10.1016/j.jep.2016.07.021. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        101. Tao L., Wang S., Zhao Y., Sheng X., Wang A., Zheng S., Lu Y. Şifalı bitkilerden elde edilen fenolkarboksilik asitler, COX-2 aktivitesinin bozulması yoluyla antikanser etkiler gösterir. Bitkisel. Int. J. Fitoter. Fitofarm. 2014; 21 :1473-1482. doi: 10.1016/j.phymed.2014.05.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        102. Aquilano K., Filomeni G., Di Renzo L., Vito MD, Stefano CD, Salimei PS, Ciriolo MR, Marfè G. Reaktif oksijen ve nitrojen türleri, insan eritrolösemi hücrelerinin K562 sorbitol ile indüklenen apoptozunda rol oynar. Ücretsiz Radic. Araş. 2007; 41 :452-460. doi: 10.1080/10715760601134459. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        103. Heo S.-K., Noh E.-K., Yoon D.-J., Jo J.-C., Koh S., Baek JH, Park J.-H., Min YJ, Kim H. Rosmarinik asit, akut promiyelositik lösemi NB4 hücrelerinde ATRA kaynaklı makrofaj farklılaşmasını güçlendirir Avro. J. Pharmacol. 2015; 747 :36-44. doi: 10.1016/j.ejphar.2014.10.064. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        104. Saiko P., Steinmann M.-T., Schuster H., Graser G., Bressler S., Giessrigl B., Lackner A., ​​Grusch M., Krupitza G., Bago-Horvath Z., et al. Epigallocatechin gallate, ellagic asit ve rosmarinic asit dNTP havuzlarını bozar ve de novo DNA sentezini ve insan HL-60 promiyelositik lösemi hücrelerinin proliferasyonunu inhibe eder: Arabinofuranosilsitosin ile sinerjizm. Bitkisel ilaç. 2015; 22 :213–222. doi: 10.1016/j.phymed.2014.11.017. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        105. Wu C.-F., Hong C., Klauck SM, Lin Y.-L., Efferth T. Akut lenfoblastik lösemi hücrelerinde Salvia miltiorrhiza kaynaklı rosmarinik asidin moleküler mekanizmaları . J. Etnofarmakol. 2015; 176 :55-68. doi: 10.1016/j.jep.2015.10.020. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        106. Lozano-Baena M.-D., Tasset I., Muñoz-Serrano A., Alonso-Moraga Á., de Haro-Bailón A. Geleneksel Olarak Tüketilen Borago officinalis Bitkilerinin Kanser Önleme ve Sağlık Faydaları. besinler 2016; 8:48 . doi: 10.3390/nu8010048. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        107. Osakabe N., Yasuda A., Natsume M., Yoshikawa T. Rosmarinic asit, epidermal inflamatuar yanıtları engeller: Faregiller iki aşamalı cilt modelinde Perilla frutescens özütünün antikanserojenik etkisi. Karsinojenez. 2004; 25 :549–557. doi: 10.1093/carcin/bgh034. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        108. Anusuya C., Manoharan S. 7,12-dimetilbenz(a)antrasen kaynaklı hamster bukkal kese karsinojenezinde rosmarinik asidin antitümör başlatma potansiyeli. J. Çevre. Patol. Toksikol. Onkol. Kapalı. Organ Int. Soc. Çevre. Toksikol. Kanser. 2011; 30 :199–211. doi: 10.1615/JEnvironPatholToxicolOncol.v30.i3.30. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        109. Karmokar A., ​​Marczylo TH, Cai H., Steward WP, ​​Gescher AJ, Brown K. Apc(Min) fareleri tarafından diyetle rosmarinik asit alımı, bir kolorektal karsinogenez modeli: Hedef dokudaki ana ajanın seviyeleri ve etkisi adenom gelişimi üzerine. Mol. Nutr. Gıda Araş. 2012; 56 :775–783. doi: 10.1002/mnfr.201100617. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        110. Karthikkumar V., Sivagami G., Vinothkumar R., Rajkumar D., Nalini N. 1,2-dimetilhidrazin ile indüklenen sıçan kolon karsinojenezinde rosmarinik asidin premalign lezyonlar ve antioksidan durumu üzerindeki modülatör etkinliği. Çevre. Toksikol. farmakol. 2012; 34 :949–958. doi: 10.1016/j.etap.2012.07.014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        111. Sharmila R., Manoharan S. 7,12-dimetilbenz(a)antrasen (DMBA) içindeki rosmarinik asidin anti-tümör aktivitesi, İsviçre albino farelerinde cilt karsinojenezini indükledi. Hint J. Uzm. Biol. 2012; 50 :187–194. [ PubMed ] [ Google Akademik ]
        112. Venkatachalam K., Gunasekaran S., Jesudoss VAS, Namasivayam N. Rosmarinik asidin 1,2-dimetilhidrazin kaynaklı kolon karsinogenezi üzerindeki etkisi. Tecrübe. Toksikol. Patol. 2013; 65 :409–418. doi: 10.1016/j.etp.2011.12.005. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        113. Baldasquin-Caceres B., Gomez-Garcia FJ, López-Jornet P., Castillo-Sanchez J., Vicente-Ortega V. Oral karsinojenezde fenolik bileşiklerin kemopreventif potansiyeli. Kemer Oral Biol. 2014; 59 :1101–1107. doi: 10.1016/j.archoralbio.2014.06.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        114. Furtado RA, Oliveira BR, Silva LR, Cleto SS, Munari CC, Cunha WR, Tavares DC Rosmarinik asidin sıçan kolon kanserojenezi üzerindeki kemopreventif etkileri. Avro. J. Kanser Önceki. Kapalı. J.Eur. Kanser Önceki. Organ. ECP. 2015; 24 :106–112. doi: 10.1097/CEJ.00000000000000055. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        115. Romo Vaquero M., García Villalba R., Larrosa M., Yáñez-Gascón MJ, Fromentin E., Flanagan J., Roller M., Tomás-Barberán FA, Espín JC, García-Conesa M.-T. Biberiye özündeki başlıca biyoaktif diterpenoidlerin biyoyararlanımı: Zucker sıçanlarının bağırsak, karaciğer, plazma ve beynindeki metabolik profil. Mol. Nutr. Gıda Araş. 2013; 57 :1834–1846. doi: 10.1002/mnfr.201300052. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        116. Doolaege EHA, Raes K., Vos FD, Verhé R., Smet SD Sıçanlarda Rosmarinus officinalis'ten Doğal Bir Antioksidan olan Karnosik Asitin Emilimi, Dağılımı ve Eliminasyonu . Bitki Besinleri Hum. Nutr. 2011; 66 :196–202. doi: 10.1007/s11130-011-0233-5. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        117. Karthikkumar V., Sivagami G., Viswanathan P., Nalini N. Rosmarinic asit, deneysel sıçanlarda DMH ile indüklenen hücre proliferasyonunu inhibe eder. J. Temel Klinik. Fizol. farmakol. 2015; 26 :185–200. doi: 10.1515/jbcpp-2014-0044. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        118. Romo-Vaquero M., Larrosa M., Yáñez-Gascón MJ, Issaly N., Flanagan J., Roller M., Tomás-Barberán FA, Espín JC, García-Conesa M.-T. Karnosik asitle zenginleştirilmiş bir biberiye özü, dolaşımdaki adipositokinleri iyileştirir ve zayıf Zucker sıçanlarında temel metabolik sensörleri modüle eder: Obez genotipte kritik ve zıt farklılıklar. Mol. Nutr. Gıda Araş. 2014; 58 :942-953. doi: 10.1002/mnfr.201300524. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        119. Avrupa Gıda Güvenliği Otoritesi (EFSA) Biberiye özlerinin gıda katkı maddesi olarak kullanımı—Gıda Katkı Maddeleri, Tatlandırıcılar, İşleme Yardımcıları ve Gıda ile Temas Eden Malzemeler Panelinin Bilimsel Görüşü. EFSA J. 2008; 6 :1–29. [ Google Akademik ]
        120. Pérez-Sánchez A., Barrajón-Catalán E., Caturla N., Castillo J., Benavente-García O., Alcaraz M., Micol V. Narenciye ve biberiye özlerinin cilt hücresinde UV kaynaklı hasar üzerindeki koruyucu etkileri model ve insan gönüllüleri. J. Photochem. Fotobiyol. B. 2014; 136 :12–18. doi: 10.1016/j.jphotobiol.2014.04.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
        121. Romo-Vaquero M., Selma M.-V., Larrosa M., Obiol M., García-Villalba R., González-Barrio R., Issaly N., Flanagan J., Roller M., Tomás-Barberán FA, et al. Karnosik Asit Açısından Zengin Biberiye Özü Seçici olarak Caecum Mikrobiyotasını Modüle Eder ve β-Glukozidaz Aktivitesini Engeller, Yağsız ve Obez Dişi Sıçanlarda Lif ve Kısa Zincirli Yağ Asitlerini Değiştirerek Dışkı Atılımını Değiştirir. PLoS BİR. 2014; 9 :e94687. doi: 10.1371/journal.pone.0094687. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5
          BİBERİYE İle Düşük Tansiyon

          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6

            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7
              Kansızlık İle Bitkisel Çözüm


              BİBERİYE İle Bayılma Ve Düşük Tansiyon

              Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

              Yorum yap


              • #8
                Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

                Yorum yap


                • #9
                  BİBERİYE İle Bayılma, Senkop Ve Düşük Tansiyon


                  Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                  Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                  Yorum yap


                  • #10
                    Düşük Tansiyon Nasıl Tedavi Edilir Tansiyon Düşüklüğüne Ne İyi Gelir


                    Yorum yap


                    • #11

                      Düşük Tansiyon Neden Olur Düşük Tansiyon Nasıl Geçer Düşük Tansiyon Nasıl Tedavi Edilir


                      Yorum yap


                      • #12
                        Kan Sulandırıcı Ürünlerimiz - Corona ve Kan Sulandırıcı

                        Yorum yap

                        Hazırlanıyor...
                        X