Duyuru

Collapse
No announcement yet.

Beta Glukan, Beta Glucan

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Beta Glukan, Beta Glucan

    Beta Glukan Beta-Glukan nedir?

    Beta-Glukan, ekmek mayası hücre duvarından ekstraktı edilen basit bir polisakkaritdir. Bağışıklık sistemimizin ilk savunmasını yapan makrofajlar (beyaz kan hücreleri) üzerindeki özel yüzeylere bağlanarak (Pili bitmiş robot gibi duran Makrofajı yeni pil takarak harekete geçirmek gibi harekete geçir), bağışıklık sistemini aktive etmesinden dolayı yıllardır bağışıklık sistemi destekleyici olarak ün kazanmış tamamen doğal bir besin desteğidir.

    Enfeksiyonlara karşı savunmadan sorumlu hücrelerini aktive ettiğinden yabancı hücreleri sarıp yokeden ve vücudun koruma mekanizmasını harekete geçiren bir seri etkiyi başlattığı gözlenmiştir. Bunun sonucu da güçlü bir bağışıklık sistemidir. Sağlıklı bireylerde kullanıldığında hastalıklara karşı dayanıklılık ve iyilik hali oluşturur.

    Her Beta Glukan aynı değildir. Bağışıklık sistemi için, etkinliği kanıtlanmış Beta Glukan 1,3/1,6 bağ yapısı olan Beta Glukandır. Beta Glukan’ın miktarı değil, partikül büyüklüğü önemli denilebilir. Çünkü vücut savunma hücreleri tarafından kullanılabilmesi için Beta Glukan partikül büyüklüğünün 10 mikrondan küçük olması gerekir.

    Beta glukan ve işlevi

    Hem primer (doğuştan), hem sekonder immün yetersizliği olan kişiler ciddi ölçüde enfeksiyon riski taşıyan bireylerdir ve enfeksiyondan korunma çok önemlidir.

    Beta-glukan, virüs, bakteri, mantar ve parazitik enfeksiyonlara karşı vücut direncinin artmasını sağlar. Monositler, makrofajlar, granülositler ve doğal öldürücü hücreler beta-glukanı tanıyan ve bağlayan özel yüzey reseptörlerine sahiptirler. Bu reseptörler beta-glukan zincirlerinin spesifik yapılarına bağlanırlar ve beta glukanın bağışıklık sisteminin uyarıcısı olarak işlev görmesini sağlarlar. Beta-glukan bağışıklık sisteminin iyi bir düzenleyicisidir ve özellikle 1,3/1,6 beta-glukanın güçlü immünomodülatör aktivite gösterdiği bilinmektedir.

    Beta-glukanın antitümör etkisi ve karsinogenezden korunma gibi immün sistemi güçlendirme (bağışıklık sistemini güçlendirme) özelliği vardır. Beta-glukan bağışıklık sistemini uyardığı gibi, aynı zamanda bağışıklık sisteminin güçlü bir düzenleyicisi olarak da etki gösterir.

    Beta-glukanın immünostimülatör (bağışıklık sistemi güçlendirici) etkisi, kanser hücre büyümesi, bakteriyel enfeksiyonun azaltılması ile sonuçlanabilir. Beta-glukanın bu bağışıklık düzenleme etkisi, makrofaj fagositozunu ayarlamada yer alan sitokinlerin makrofajlardan salınımını uyarma veya engelleme yeteneğiyle ilişkilidir.

    Beta-glukan 1,3 / 1,6 bağ yapısı

    • Ekmek mayasından (Saccharomyces cerevisiae) elde edilen bağışıklık sistemini güçlendiren doğal bir maddedir.
    • Bağışıklık cevabını artırarak vücut savunma hücrelerinin patojenleri daha etkili şekilde yok etmesini sağlar.

    Beta Glukan ne gibi durumlarda kullanılır? Beta Glukan kimlere kullanılır?

    • Grip ve soğuk algınlığı
    • Alt ve üst solunum yolu ekfeksiyonları
    • Tekrarlayan enfeksiyonlar
    • Okul, işyer gibi kapalı ortamlarda hızla bulaşan enfeksiyonlar
    • Yoğun temponun (iş, sınav dönemi, seyahat) yarattığı stresin olumsuz sonuçları
    • Düzensiz ve sağlıksız beslenmenin olumsuz sonuçları
    • Tekrarlayan aft ve uçuklar

    Beta Glukan ne zaman kullanılır? Beta Glukan kullanım süresi nedir?
    Genel sağlığı ve beslenmeyi destekleyici olarak her gün kullanılabilir.

    Beta Glukanın günlük dozu nedir?

    Çocuklarda 1 yaşın üzerinde günlük 10 mg Beta Glukan içeren şurup formlar kullanılabilir. Yetişkinler için günlük 20 mg Beta Glukan içeren formlar kullanılabilir. Hastalık esnasında doz artırılabilir.

    Nuran Serinkaya
    BETA GLUKAN SETİ kullanıyorum. BAĞIŞIKLIK SİSTEMİNİ DÜZENLİYOR, İŞTAH AÇIYOR mis gibi kokusu var çok faydasını gördüm daha yeni kullanmaya başladım kendine has müthiş özellikleri var.
    KAYNAK

    Gaye Erdem
    GRİP ve SOĞUK ALGINLIĞI problemim vardı geçmek bilmiyordu burnum artık yara olmuştu BETA GLUKAN SETİ kullandım Allah'a çok şükür şuan çok çok iyim halsizliğim gitti burnum akmıyor enerjim yerine geldi.
    KAYNAK

    Yunus Yilmaz
    BETA GLUKAN, KEKİK ve CHLORELLA KAPSÜL kullandım 1 haftada çok şükür SONUCUM NEGATİF ÇIKTI. Yüce rabbim sizden razı olsun.
    KAYNAK

    serinkayanuran
    Hocam hayırlı akşamlar, BETA GLUKAN - BA SETİ ürünlerini kullandım iyi ki de ürünleri getirtmişim. Hastaneye gittim doktora şikayetlerimi anlattım ateşin yok, boğazında da bir şey yok dedi. Ömrümde hiç böyle İŞTAHIM KESİLMİŞTİ su dahi içemiyordum hiçbir şey yiyemedim artık bağırsaklarımdan toksinler gelmeye başladı. İyi ki hocamızın BETA GLUKAN BA SETİNİ kullandım hocamızın sayesinde hayatıma geri döndüm. Şükürler olsun şimdi İŞTAHIM AÇILDI her şeyi yemeye başladım sağlığıma yeniden kavuştum. Hiç kimse bu hastalığı çekmesin Gökçek hocamıza başvursun yoksa doktorlar sende corona var deyip çıkıyorlar işin içinden. Ben çok ÜŞÜTMÜŞTÜM dayanamadım da Allah'ım korusun korona olan nasıl dayansın. Bir üşütmeye dayanamadım benim iştahım kesildi ama hocamızın ürünleri sayesinde 3 gün içinde iştahım açıldı. Hocamıza çok teşekkürler Allahım razı olsun sizlerin sayesinde sağlığıma kavuştuk çok teşekkürler hocam.
    KAYNAK

    Ayhan Kavutlar
    BETA GLUKAN KAPSÜL ve EKİNEZYA KAPSÜL kullanıyorum soğuk havalarda BAĞIŞIKLIK SİSTEMİNİ GÜÇLENDİRİYOR çok memnunum.
    KAYNAK

    serinkayanuran
    BETA GLUKAN SETİ kullandım BAĞIŞIKLIK SİSTEMİNİ DÜZENLİYOR hiçbir şey yiyemezdim şimdi her şeyi yemeye başladım İŞTAH AÇIYOR kendine has güzelde bir kokusu var.
    KAYNAK
    Konu fatih tarafından (https://bitkiara.com/vb5/member/363-fatih Saat 18 January 2021, 16:53 ) değiştirilmiştir.

  • #2
    Karboksi-Metil-Beta-Glukan ile Vajinal Tedavi Gören Pozitif HPV Hastalarında Vajinal Mikrobiyota Restorasyonu ve Servikal Epitelizasyon Üzerine Etkileri

    Giada Lavitola , 1 Luigi Della Corte , 1 Nicoletta De Rosa , 1 Carmine Nappi , 2 ve Giuseppe Bifulco 1
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi

    1 Nörobilim, Üreme Bilimleri ve Diş Hekimliği Anabilim Dalı, Tıp Fakültesi, Napoli Üniversitesi Federico II, Via Sergio Pansini, Napoli, İtalya
    2 Halk Sağlığı Departmanı, Napoli Üniversitesi Federico II, Via Sergio Pansini, Napoli, İtalya

    Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .

    İlişkili Veriler
    Soyut
    Amaç
    HPV enfeksiyonu veya düşük dereceli servikal preneoplastik lezyonu (CIN 1) olan hastalarda karboksi-metil-beta-glukanın servikal epitelizasyon ve vajinal mikrobiyota üzerindeki etkilerini değerlendirin.

    Malzemeler ve yöntemler
    HPV testleri pozitif olan veya CIN 1 teşhisi konan 784 (yedi yüz seksen dört) kadın, geriye dönük bir vaka kontrol çalışmasına dahil edildi. İşe alınan tüm kadınlara başlangıçta ve 6 ay sonra Pap testi, HPV testi, Amsel kriterlerine göre vajinal sağlığın değerlendirilmesi, kolposkopi ve punch biyopsisi uygulandı. Çalışma popülasyonu daha sonra takip döneminde uygulanan terapiye göre 2 gruba ayrıldı. Grup A, karboksi-metil-beta-glukan bazlı vajinal jel ile tedavi gerçekleştirdi (3 ay boyunca ayda 20 gün 1 uygulama/gün). B grubu kontrol grubuydu.

    Sonuçlar
    Grup A hastalarında ektopi paterninde önemli bir iyileşme ve Lugol alımında önemli bir artış ile matürasyon fazında metaplazili daha fazla sayıda vaka vardı. Deney grubunda pH indekslerinde önemli bir iyileşme, Swift testinin negatif çıkması ve beyaz akıntının çözülmesi gözlemlendi. Kontrol grubuna göre tedavi grubunda %37.1 Pap testi ve %39.9 HPV testinin (sırasıyla %15.2 ve %16.5'e karşı) negatif bir sonucu gösterildi. Tedavi grubunda daha yüksek bulunan CIN 1 miktarında azalma ile kolposkopik resimlerin negatifleştiği gözlendi.

    Sonuçlar
    Karboksi-metil-beta-glukan bazlı vajinal terapi, genel vajinal sağlığı iyileştirebilmiştir; bu etki, CIN'in kalıcılığı ve ilerlemesi riskini olumlu yönde etkiliyor gibi görünüyordu.

    1. Giriş
    HPV (insan papilloma virüsü) enfeksiyonu esas olarak cinsel temas yoluyla bulaşır ve serviks, papilloma virüsünün onkojenik etkisine en duyarlı organdır. Serviks iki epitel ile kaplıdır: esoservikal olan ve döşeli tip ve endoservikal olan ve silindirik tip. Bu geçiş bölgesi, biyolojik bir bakış açısından, HPV gibi onkojenik ajanların hedef rezerv hücrelerinin bazal bölgesine daha kolay erişime izin verdiği için bir kararsızlık alanını temsil eder [ 1 ].

    HPV enfeksiyonu özellikle genç kadınlarda çok yaygındır (en yüksek insidans 20 ila 30 yaş arasında pik yapar).
    Enfeksiyon için pozitif olan ancak virüsün servikal prekanseröz lezyonlara (CIN) neden olmadığı risk altındaki kadınların bir yüzdesi vardır. Virüs servikal epitelyum hücrelerine entegre olduğunda, hücresel dönüşüm sürecini belirler ve CIN lezyonlarına yol açar [ 2 , 3 ].

    Son veriler, bağışıklık durumu ile virüsün kalıcılığı arasında önemli bir ilişki olduğunu göstermektedir. Vajinal mikrobiyota, kadın genital sisteminin bağışıklık sisteminin modüle edilmesinde önemli bir rol oynar [ 4 ]. Lactobacillus crispatus , Lactobacillus gasseri , Lactobacillus iners ve Lactobacillus jensenii , çoğu sağlıklı kadının vajinasına hakim görünüyor. Vajinal mikrobiyotanın bileşimi çok sayıda faktörden etkilenir: etnik köken, adet döngüsü boyunca östrojen ve progesteronun döngüsel salgılanması, adet veya menopoz durumu, doğum kontrol amaçlı sentetik hormonların yaygın kullanımı, cinsel ilişki, hijyen uygulamaları ve enfeksiyon [ 5 ] .

    HPV'nin kalıcılığını, değişmiş vajinal laktobasil varlığı ve değişmiş bir mikrobiyota ile ilişkilendirecek çok sayıda kanıt vardır. Vajinal mikrobiyotanın dengeli bir durumu, HPV'ye karşı daha iyi bir yanıt sağlar [ 6 – 9 ]. İyi epitelize olmuş bir serviks, sağlıklı bir epiteli, olgun ve küçük bir transformasyon bölgesi uzantısına sahip olsa bile, virüsün enfeksiyonu ve kalıcılığı için elverişsiz bir ortam sunar.

    Mevcut düşünce, papilloma virüsü ile ilişkili hastalığın gelişiminin sadece epitelyal bazal hücrenin değil, daha spesifik olarak çok katmanlı kutanöz veya mukozal bölgedeki epitelyal doku kök hücresinin enfeksiyonunu gerektirdiğini düşündürmektedir. Servikste, transformasyon bölgesi, yedek hücre olarak bilinen özel bir hücre tipi tarafından korunur. Servikal neoplazi, öncelikle skuamokolumnar bileşkede gelişir, çünkü bu hücreler viral gen ekspresyonunu düzgün bir şekilde düzenleyemezler, bu da üretken bir enfeksiyondan ziyade üretken olmayan veya abortif bir enfeksiyona yol açar. Papillomavirüslerin enfeksiyondan sonra genellikle epitelyal bir kök hücrede bulunduğu fikri, bizim latans ve latanstan reaktivasyon anlayışımızla uyumludur. Gecikme sırasında, virüs ortak tanı testi tarafından tespit edilemeyebilir [ 1, 10 ].

    Vajinal sağlığın yeterli düzeyde korunması veya iyileştirilmesi ve servikal epitel ve vajinal mikrobiyota üzerinde olumlu etkide bulunulması, HPV enfeksiyonunun hem bulaşmasını hem de kalıcılığını ve CIN lezyonlarının ilerlemesini önlemek için yeni bir strateji olabilir.

    1.1. Bu çalışmanın amacı
    Bu çalışma, HPV enfeksiyonu veya düşük dereceli servikal preneoplastik lezyonu olan hastalarda karboksi-metil-beta-glukan bazlı vajinal jel ile lokal tedavinin servikal epitelizasyon ve vajinal mikrobiyota üzerindeki etkilerini değerlendirmeyi amaçlamaktadır.

    2. Malzemeler ve Yöntemler
    Bölümümüz Kolposkopi ve Servikal Patoloji Merkezine sevk edilen ve HPV testi pozitif olan veya CIN 1 tanısı konan yedi yüz seksen dört kadın retrospektif bir vaka kontrol çalışmasına alındı.

    Aşağıdaki kayıt kriterlerini karşılayan tüm hastalar seçildi:
    1. 18 ila 60 yaş arası
    2. Kafkas kökenli
    3. Delme biyopsisinde HPV testi pozitifliği ve/veya CIN 1 pozitifliği
    4. Önerilen tedavilere kontrendikasyon yokluğu
    5. Mevcut veya yakın tarihli çalışmadaki unsurlara etki eden herhangi bir farmakolojik tedavi türü için olumsuz tıbbi geçmiş (<3 ay)
    6. Virüsün doğal seyrini, özellikle bağışıklık bozukluklarını ve diyabeti etkileyebilen sistemik patolojiye bağlı olumsuz tıbbi öykü
    Dışlama kriterleri aşağıdaki gibiydi:
    1. 18 yaş altı veya 60 yaş üstü
    2. CIN 2+ lezyon için biyopsi pozitifliği
    3. Vajinal jelin bileşenlerine karşı şüphelenilen veya teşhis edilen aşırı duyarlılık/alerji
    4. Mevcut veya yakın tarihli çalışma sonuçlarına etki eden her bir tedavi türü için pozitif bir tıbbi geçmiş (<3 ay)
    5. Bağışıklık sisteminin spesifik eksikliği durumları
    İşe alım sırasında, her bir kişi, yazılı bir bilgilendirilmiş olurun yerine getirilmesiyle çalışmanın amaçları ve yöntemleri hakkında bilgilendirildi. Çalışma Federico II Üniversitesi etik kurulu tarafından onaylandı ( sayı protokolü : 260/18 ).

    Çalışmaya dahil edilen hastaların verileri Ocak 2013 tarihinden itibaren merkeze katılan hastaların tıbbi kayıtlarından alınmıştır.

    Tüm katılımcılar için önceki klinik öykü, yaş, spesifik risk faktörleri ve hasta kaydına göre önceki sitoloji raporu değerlendirildi.

    İşe alınan tüm kadınlar tam bir klinik muayeneden ve 6 ay sonra takipten geçmiştir; özellikle jinekolojik ve fizik muayene, Paptest ve/veya HPV testi yaptıran ve Amsel kriterlerine göre vajinal sağlığın değerlendirilmesi (lökorya varlığı, vajinal pH > 4,5, Swift testinin pozitifliği ve ipucu hücrelerinin varlığı) ).

    ZTA (anormal transformasyon zonu) varlığında kolposkopi sırasında hedefe yönelik punch biyopsi alındı.

    Çalışma popülasyonu daha sonra takip döneminde gerçekleştirilen terapi ile ilgili olarak 2 gruba ayrıldı:
    1. Grup A: Vajinal jel bazlı karboksi-metil-beta-glukan (Colpofix®: 3 ay boyunca ayda 20 gün süreyle 1 uygulama/gün) ile tedaviyi gerçekleştiren, HPV testi veya CIN 1 tanısı pozitif olan 392 kadın;
    2. Grup B: Kontrol grubu olarak tedavi görmemiş 392 kadın
    Grup A'da uyum, tedavi güvenliği ve yan etkilerin başlangıcı veya alerjik duyarlılık yönleri de değerlendirildi.

    2.1. İstatistiksel analiz
    İncelenen örnek sayısı, literatürde bildirildiği gibi [ 11 ] düşük dereceli servikal lezyonların yaklaşık %60'ının 12-24 ay boyunca herhangi bir tedavi olmaksızın kendiliğinden gerilediği varsayımından yola çıkılarak hesaplanmıştır ve bu değer de daha yüksektir. sadece pozitif HPV testi durumunda. Adjuvan tedavi sırasında bu regresyonlarda en az %10'luk önemli bir artış olduğu varsayıldığında, hesaplamayı %5 (CI. %95) ve 1 − β = %80'lik bir alfa hatasıyla ayarlayarak örneklem büyüklüğü aşağıdaki gibi olmalıdır. grup başına en az 356 hasta. %10'luk bir kayıp göz önüne alındığında (verilerin tam olmaması nedeniyle) bu değerin 392 hastaya çıkarılmasına karar verildi.

    İstatistiksel analiz için SPSS yazılımı (versiyon 20.0) kullanıldı. Önem, p < 0.05 değerine ayarlandı .

    İki grubun demografik ve klinik verileri, parametrik dağılıma (yaş, ağırlık) sahip veriler için Student t testi ve sıralı değişkenler için χ 2 testi (Pap testi sonucu, vajinal sürüntü sonucu ve kolposkopik rapor) ile karşılaştırıldı. İki grup arasında CIN lezyon sayısı ve HPV test pozitifliği farklılıkları χ 2 testi ile değerlendirildi. OR ölçümü (olasılık oranı), enfeksiyon veya lezyonların devam etme riskini değerlendirmek için kullanıldı.

    3. Sonuçlar
    Veri analizi sonucunda, protokole göre 358 A grubu, 367 B grubu olmak üzere dahil edilme kriterlerini karşılayan ve takibini tamamlamış 725 hasta bulundu. çalışma rapor edilirtablo 1. İki grup yukarıda belirtilen değişkenlerle karşılaştırılabilirdi ( p = NS).

    tablo 1
    İncelenen deneklerin demografik ve anamnestik değişkenleri.
    Yaş (yıl) § 34.02 ± 6.5 34,2 ± 6,2 0.71
    Parite (no.) ∗ 1 (0-3) 1 (0-3) 0,52
    Eğitim seviyesi ∗ 2 (1-3) 2 (1-3) 0.64
    Duman°
     ≤10 işaret/kalıp 190 (53.1) 187 (52.2) 0.81
     >10 imza/öl 168 (46,9) 171 (47.8)
    Alkol alışkanlıkları°
     Haftalık 301 (84.1) 318 (86,6) 0.33
     Günlük 57 (15,9) 49 (13.4)
    Cinsel partner°
     ≤4 94 (26,3) 112 (30,5) 0.20
     >4 264 (73,7) 255 (69,5)
    Ayrı bir pencerede aç
    ° χ kare, § t -testi, ∗ Mann–Whitney.

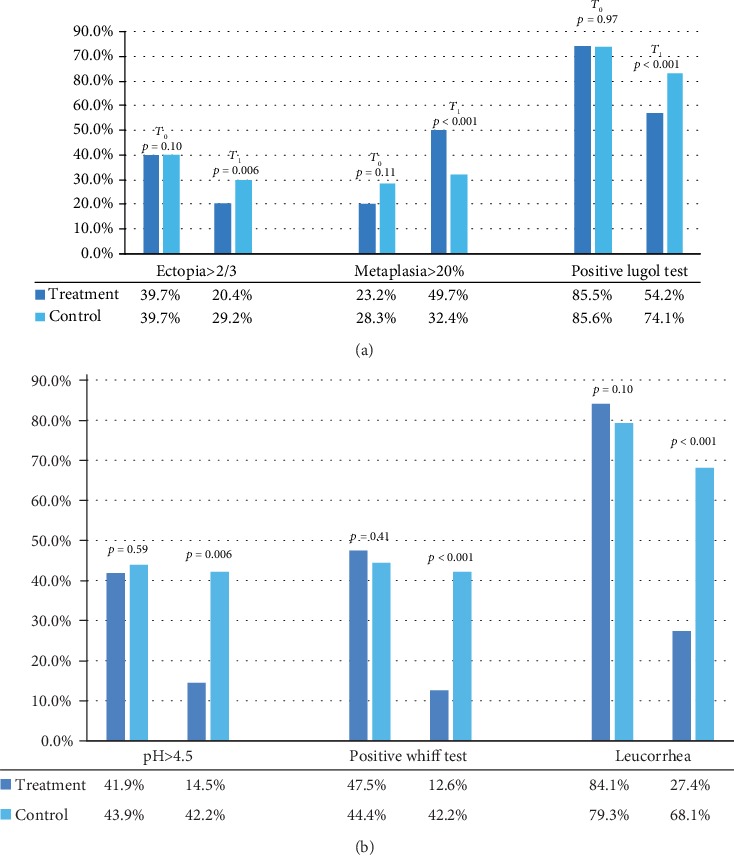
    Vajinal ve doku sağlığı sonuçlarına bakıldığında, tedaviyi uygulayan hastaların kontrol grubuna göre ektopi paterninde belirgin düzelme olduğu görüldü (Şekiller).​(Şekiller11ve​ve 2):2): metaplazinin daha fazla uzaması (> %20) ve Lugol alımında önemli bir artışla birlikte olgunlaşma aşamasında metaplazili daha fazla sayıda vaka (Tablo 2veŞekil 3(a)).


    Şekil 1
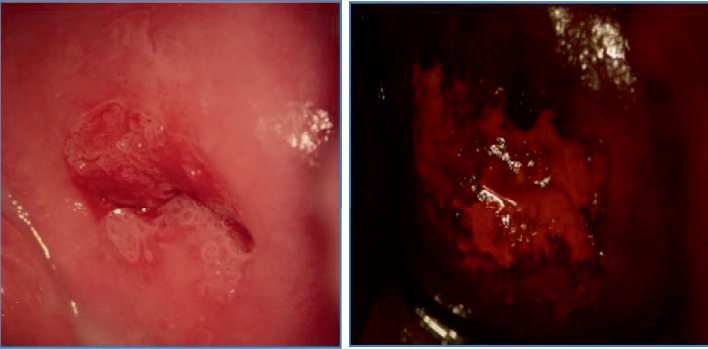
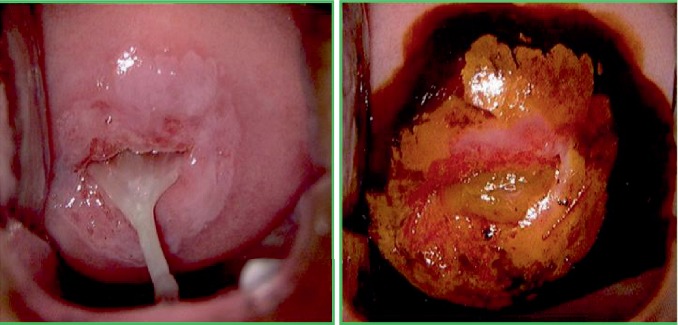
    Anormal transformasyon bölgesi (ATZ)—CIN 1, karboksi-metil-beta-glukan ile muameleden önce.


    şekil 2
    Karboksi-metil-beta-glukan ile muameleden sonra normal dönüşüm bölgesi (NTZ).


    Figür 3
    (a) İki çalışma grubundaki epitelizasyon ve vajinal sağlık indeksleri. (b) İki çalışma grubundaki epitelizasyon ve vajinal sağlık indeksleri. Tablo 2


    İki çalışma grubunda epitelizasyon ve vajinal sağlık indeksleri.
    ektopya 0.10 0.006
     ≤2/3 216 (60,3) 244 (66.5) 285 (79.6) 260 (70,8)
     >2/3 142 (39,7) 123 (39,7) 73 (20.4) 107 (29.2) -48.6% -13%
    metaplazi 0.11 <0,001
     ≤20% 275 (76.8) 263 (71,7) 180 (50,3) 248 (67.6)
     >%20 83 (23.2) 104 (28.3) 178 (49.7) 119 (32.4) %114,5 %14.4
    Lugol testi 0.97 <0,001
     Olumsuz 52 (14,5) 53 (14,4) 164 (45,8) 95 (25.9)
     Pozitif 306 (85.5) 314 (85,6) 195 (54.2) 272 (74,1) -%36.3 -13.4
    pH 0,59 <0,001
     ≤4.5 208 (58.1) 206 (56.1) 306 (85.5) 212 (57.8)
     >4.5 150 (41.9) 161 (43.9) 52 (14,5) 155 (42.2) -65.3% -%3.7
    hızlı testi 0,41 <0,001
     Olumsuz 188 (52,5) 204 (55.6) 313 (87,4) 212 (57.8)
     Pozitif 170 (47,5) 163 (44.4) 45 (12.6) 155 (42.2) -%73,5 -%4.9
    leucorrhoea 0.10 <0,001
     Mevcut olmayan 57 (15,9) 76 (20.7) 260 (72,6) 117 (31,9)
     Mevcut 301 (84.1) 291 (79.3) 98 (27,4) 250 (68.1) -%67,4 -%14,1
    Ayrı bir pencerede aç
    Deney grubunda pH indekslerinde önemli bir gelişme, Swift testinin negatif olması ve beyaz akıntının çözülmesi gözlemlendi (Tablo 2veŞekil 3(b)).

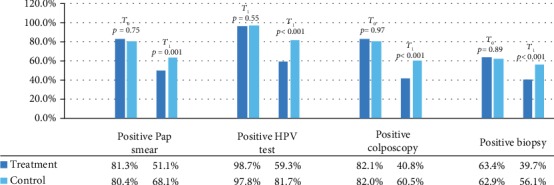
    Tablo 3çalışmadaki hastaların sitohistolojik, moleküler ve kolposkopik verilerini gösterir. Kontrol grubuna tedavi grubunda %37.1 Pap testi ve %39.9 HPV testinin (sırasıyla %15.2 ve %16.5) negatif sonucu gösterildi. Bu verilerle uyumlu olarak, tedavi grubunda daha yüksek bulunan CIN 1 miktarında azalma ile kolposkopik resimlerin negatifleştiği gözlenmektedir. Genel olarak 6 ayda toplam popülasyonda yaklaşık %20 oranında (%63,2'den %48,0'a) bir CIN 1 lezyon gerilemesi gözlenir.

    Tablo 3


    İki çalışma grubundaki sitolojik, moleküler, kolposkopik ve histolojik raporlar.
    Pap smear 0.75 <0,001
     Olumsuz 67 (18.7) 72 (19.6) 175 (48,9) 117 (31,9)
     Pozitif 291 (81.3) 295 (80.4) 183 (51,1) 250 (68.1) -%37.1 -%-15.2
    HPV testi 0,55 <0,001
     Olumsuz 2 (1.3) 4 (2.2) 61 (40,7) 33 (18.3)
     Pozitif 148 (98.7) 176 (97.8) 89 (59,3) 147 (81.7) -39.9% -%16,5
    kolposkopi
     Olumsuz 64 (17.9) 66 (18.0) 0.97 212 (59,2) 145 (39,5) <0,001
     Pozitif 294 (82.1) 301 (82.0) 146 (40.8) 222 (60.5) -%50,3 -%26,2
    Biyopsi
     Olumsuz 131 (36.6) 136 (37.1) 0.89 216 (60,3) 161 (43.9) <0,001
     Pozitif 227 (63.4) 231 (62,9) 142 (39,7) 206 (56.1) -%37.4 -%-10,8
    Ayrı bir pencerede aç
    Tedavi gören hastalar tarafından herhangi bir yan etki bildirilmemiştir (Şekil 4).

    Şekil 4
    İki çalışma grubundaki sitolojik, moleküler, kolposkopik ve histolojik raporlar.

    Enfeksiyon veya lezyonların kalıcılığı için risk faktörlerinin analizi (Tablo 4), yaşam tarzı risk faktörleri arasında sigara içmenin (10 sig/ölümden fazla) lezyonun kalıcılık riskinde yaklaşık 2 kat artışa yol açtığını göstermiştir. Ektopinin varlığı, 4.5'ten büyük bir vajinal pH ve pozitif Swift testi, lezyonun devam etme riskini iki katına çıkarır ve beyaz akıntının varlığı, lezyonun kalıcılığından 3.5 kat daha büyük bir risk taşır. Tedaviyi tersten yapmak bu riski yarı yarıya azaltır.

    Tablo 4
    İncelenen değişkenlerle ilgili olarak yaralanmanın kalıcılığının nispi riski.
    Sigara içme alışkanlığı > 10 cig 216 384 2.04 (1.51-2.74)
    Günlük alkol kullanımı 46 106 0,81 (0,53-1,21)
    Ortak > 4 255 519 1.17 (0.85-1.62)
    Ektopi > 2/3 117 180 2.52 (1.78-3.58)
    Metaplazi > %20 145 297 1.06 (0.78-1.42)
    Lugol testi pozitif 305 466 9,52 (6,51-13,90)
    pH > 4,5 126 207 2.07 (1.49-2.88)
    Wift testi pozitif 122 200 2.07 (1.48-2.89)
    Leucorrhoea varlığı 222 348 3.51 (2.58-4.76)
    Tedavi 142 358 0,51 (0,38-0,69)
    4. Tartışma
    HPV enfeksiyonunun sebat etme riski ve bir CIN lezyonunun ilerlemesi ile ilgili birçok faktör rapor edilmiştir. Son yıllarda birçok çalışma, vajinal mikrobiyomun stabilitesi ve bileşiminin viral klirensi ve muhtemelen servikal preneoplastik lezyonların ilerlemesini etkileyebileceğini göstermiştir [ 1 , 4-9 ] .

    Kullanılan tedavi karboksi-metil-beta-glukan, vajinal mukoza üzerinde dış mikrobiyal ajanlardan koruyan ve servikovajinal mukozanın işlem alanlarının fizyolojik koşullarının korunmasına ve kontrol edilmesine yardımcı olan muko-yapışkan bir film oluşturabilen hidrofilik polimerlere dayanmaktadır. hidrasyon. Karboksi-metil-beta-glukan, prebiyotik bir etki yoluyla vajinal mikrobiyotanın korunmasına ve/veya restorasyonuna katkıda bulunur.

    Verilerimiz, polikarbofil vajinal tedavisinde in vivo karboksi-metil-beta-glukanın servikal epitelizasyonu nasıl iyileştirebileceğini göstermiştir. Gerçekten de, kontrol grubuna kıyasla tedavi grubunda şiddetli ektropionda (>2/3) bir azalma ile ektopi paterninde bir iyileşme gözlemlendi, buna karşılık gelen metaplazinin hızında ve yayılmasında bir artış ve tutulumda bir iyileşme gözlendi. Lugol testi, sabit olmayan testi olan hastaların oranında bir azalma ile.

    Gözlenen metaplazi ve Lugol testi alımı, silindirik gibi hassas bir dokunun çok katmanlı skuamöz doku gibi vajinal saldırılara daha dirençli dokuya dönüştürülmesiyle ektopinin onarım sürecinin ifadeleriydi.

    Bu onarım muhtemelen doku iltihabı oranlarında bir azalmayı ve enfeksiyon gelişimine yatkınlığı içerir. Gerçekten de, tedavinin, ilk ziyarette bakteriyel veya fungal vulvovajinitin klinik belirtilerini gösteren hastaların vajinal sağlığını iyileştirdiği gösterilmiştir. Tedavi, tedavi görmeyen gruba kıyasla vakaların daha önemli bir yüzdesinde beyaz akıntının çözülmesine, vajinal pH'ın normalleşmesine ve Swift testinin negatifleşmesine neden oldu.

    Verilerimiz, CIN 1'in histolojik teşhisinden itibaren 6 ayda, tedavi grubunda (%23,7; n = 85/358), kontrol grubundan (%6,8; n = 25/367) önemli ölçüde daha yüksek bir gerileme oranı göstermiştir.

    Literatür, 12-24 aylık bir süre boyunca yaklaşık %60'lık bir spontan CIN 1 lezyon remisyon oranı bildirmiştir [ 11 ]. Verilerimiz Scardamaglia ve ark. [ 12 ] ve Stentella ve ark. [ 13 ], karboksimetil beta-glukan ile tedavi edilen hastalarda CIN 1 lezyonunda önemli bir gerileme sergilemiştir.

    Çalışma popülasyonunda gözlemlenen iyileşmenin, kısa takip aralığı (6 ay) olarak uygulanan tedaviye atfedilebilir olması muhtemeldir. Etki muhtemelen tıbbi cihazın vajinal ortamın daha fazla stabilitesini sağlama yeteneğine bağlıydı.

    Bakteriyel vajinozun (VB) varlığı, CIN'li hastalarda HPV klirensinde bir gecikme ile ilişkilendirilmiştir, bu da zayıf bir laktobasil mikrobiyotasının (topluluk durumu tip-IV-CST IV) varlığının bu kalıcılıkta rol oynayabileceğini düşündürmektedir. Aynı zamanda, vajinal mikrobiyotanın (CST-IV) daha fazla çeşitliliğinin, daha fazla CIN lezyon şiddeti ile ilişkili olduğu gösterilmiştir [ 14 ].

    Laktobasil üreten H2O2'nin varlığı, displazinin ilerlemesini ve nihayetinde kanserojen süreci önlemede koruyucu görünmektedir . Her ikisi de H 2 O 2 üreticisi olan L. jensenii ve L. coleohominis prevalansının HSIL'ye kıyasla LSIL'li kadınlarda daha yüksek olduğu gösterilmiştir. Ayrıca, laktik asit konsantrasyonlarından bağımsız olarak, Lactobacilli spp. servikal kanser hücrelerine karşı in vitro kültürlendiğinde sitotoksik olabilir, ancak normal hücrelerde değil, servikal hücreler, mikrobiyota ve vajinal ortam arasında daha da karmaşık bir etkileşimi vurgular [ 6 ].

    Bu çalışma, vajinal mikrobiyotanın düzeltilmesinin ve spesifik bir terapi ile servikal epitelizasyonun desteklenmesinin CIN 1 lezyon gerilemesinden yana olduğunu göstermiştir.

    Verilerimiz leucorrhoea, pozitif Swift testi ve temel vajinal pH varlığının servikal seviyede CIN lezyonu kalıcılığı riskinin en az iki katına çıkmasıyla korele olduğunu doğruladı.

    Aktif ve pasif sigara içimi, HPV enfeksiyonu varlığında CIN gelişiminde ana risk faktörlerinden biridir [ 15 ]. Min ve ark. yakın zamanda sigara içenlerin hem CIN 1 (OR = 1.81; %95 GA, 1.26-2.60) hem de CIN 2/3 (OR = 1.77; %95 GA, 1.10-2.86) riskinin arttığını göstermiştir [ 16 ].

    Lezyonların kalıcılığı, serviks kanseri varlığı ve alkol tüketimine ilişkin veriler az ve tartışmalı olmasına rağmen, alkol tüketimi HPV enfeksiyonuna yakalanmada potansiyel bir risk faktörü olarak bilinmektedir [ 17 – 19 ]. Çalışmamızda, sigara içenlerde kalıcı lezyon riskinin arttığını, ancak alkol tüketiminin bulunmadığını gösterdik.

    Yüksek hasta sayısı, tanı testlerinin uygulanması (her zaman aynı operatörler tarafından gerçekleştirilir) ve kısa takip süreleri (6 ay) bu çalışmanın güçlü yanlarını temsil ediyordu.

    Yalnızca ilk ziyaretten 6 ay sonra yeniden değerlendirme süresi olan hastaların kaydının seçilmesi, diğer çevresel faktörlerin neden olduğu vajinal ortam değişikliklerini en aza indirmeye ve kolposkopik resimlerde ve histolojik bulgularda gözlenen iyileşmenin doğal ile bağlantılı olabileceğini hariç tutmayı mümkün kılmıştır. HPV enfeksiyonu öyküsü. Çalışmaya sadece Kafkasyalı hastaların dahil edilmesinin seçimi, etnisitenin CIN riski ve diğer popülasyonlardaki servikal mikrobiyota farklılıkları üzerindeki etkisini siler. Gerçekten de, göçmen kadınların genel HPV yaygınlık oranının, İtalyan kadınlar arasında gözlenen genel yaygınlıktan dört kat daha yüksek olduğu gösterilmiştir [ 20 ].

    Çalışmanın sınırlamaları, retrospektif doğası ve bir plasebo grubuyla randomizasyon olmamasıydı.

    Sonuç olarak, karboksi-metil-beta-glukan bazlı vajinal tedavinin, rahim serviksinin düşük dereceli servikal lezyonlarının devamlılığı ve ilerlemesi riski üzerinde olumlu bir etki ile genel vajinal sağlığı iyileştirdiği ortaya çıktı.

    Git: Veri kullanılabilirliği
    Bu çalışmanın bulgularını desteklemek için kullanılan veriler, istek üzerine ilgili yazardan temin edilebilir.

    Git: açıklama
    Bu çalışma, Napoli Üniversitesi Federico II'nin kolposkopik ambulatuvarı bağlamında gerçekleştirilmiştir. Bu makale 8. Avrupa EFC Kongresi'nde (Avrupa Kolposkopi Federasyonu) sunulmuştur.

    Git: Çıkar çatışmaları
    Yazarlar herhangi bir çıkar çatışması olmadığını beyan eder.

    Git: Yazar katkıları
    GL, protokol geliştirme, veri toplama ve yönetimine ve el yazmasının yeniden gözden geçirilmesine katkıda bulunmuştur. LDC, veri toplama ve analizine ve el yazması yazımına katkıda bulunmuştur. NDR, protokol geliştirme, veri yönetimi ve analizi ve el yazması yazımına katkıda bulunmuştur. CN, el yazmalarının yeniden gözden geçirilmesine katkıda bulundu. GB, el yazmalarının düzenlenmesine ve yeniden gözden geçirilmesine katkıda bulunmuştur.

    Git: Referanslar

    1. Egawa N., Egawa K., Griffin H., Doorbar J. insan papilloma virüsleri; epitelyal tropizmler ve neoplazinin gelişimi. Virüsler . 2015; 7 (7):3863–3890. doi: 10.3390/v7072802. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    2. Munoz N. İnsan papilloma virüsü ve kanser: epidemiyolojik kanıtlar. Klinik Viroloji Dergisi . 2000; 19 (1-2):1–5. doi: 10.1016/s1386-6532(00)00125-6. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    3. Myers ER, McCrory DC, Nanda K., Bastian L., Matchar DB İnsan papilloma virüsü enfeksiyonu ve servikal karsinogenezin doğal tarihi için matematiksel model. Amerikan Epidemiyoloji Dergisi . 2000; 151 (12):1158–1171. doi: 10.1093/oxfordjournals.aje.a010166. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    4. Audirac-Chalifour A., ​​Torres-Poveda K., Bahena-Román M., et al. Rahim ağzı kanserinin çeşitli aşamalarında servikal mikrobiyom ve sitokin profili: bir pilot çalışma. PLoS Bir . 2016; 11 (4):s. e0153274. doi: 10.1371/journal.pone.0153274. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    5. Mitra A., MacIntyre DA, Marchesi JR, Lee YS, Bennett PR, Kyrgiou M. Vajinal mikrobiyota, insan papilloma virüsü enfeksiyonu ve servikal intraepitelyal neoplazi: ne biliyoruz ve bundan sonra nereye gidiyoruz? Mikrobiyom . 2016; 4 (1):s. 58. doi: 10.1186/s40168-016-0203-0. Gözden geçirmek. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    6. Motevaseli E., Shirzad M., Akrami SM, Mousavi AS, Mirsalehian A., Modarresi MH Normal ve tümör servikal hücreleri, pH ve laktattan bağımsız olarak vajinal laktobasillere farklı tepki verir. Tıbbi Mikrobiyoloji Dergisi . 2013; 62 (7):1065-1072. doi: 10.1099/jmm.0.057521-0. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    7. Gillet E., Meys JFA, Verstraelen H., et al. Bakteriyel vajinoz, uterus servikal insan papilloma virüsü enfeksiyonu ile ilişkilidir: bir meta-analiz. BMC Bulaşıcı Hastalıklar . 2011; 11 (1) doi: 10.1186/1471-2334-11-10. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    8. Lee JE, Lee S., Lee H., et al. Koreli bir ikiz kohortunda vajinal mikrobiyotanın insan papilloma virüsü enfeksiyonu ile ilişkisi. PLoS Bir . 2013; 8 (5, makale e63514) doi: 10.1371/journal.pone.0063514. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    9. Gao W., Weng J., Gao Y., Chen X. İnsan papilloma virüsü enfeksiyonu olan ve olmayan kadınların vajinal mikrobiyota çeşitliliğinin karşılaştırılması: kesitsel bir çalışma. BMC Bulaşıcı Hastalıklar . 2013; 13 (1) doi: 10.1186/1471-2334-13-271. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    10. Doorbar J., Griffin H. Servikal neoplazi ve hücresel kökenleri hakkındaki anlayışımızı geliştirmek. Papillomavirüs Araştırması . 2019; 7 :176–179. doi: 10.1016/j.pvr.2019.04.005. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    11. Bansal N., Wright JD, Cohen CJ, Herzog TJ Yerleşmiş düşük dereceli servikal intraepitelyal (CIN 1) lezyonların doğal öyküsü. Antikanser Araştırması . 2008; 28 (3B):1763–1766. [ PubMed ] [ Google Akademik ]
    12. Scardamaglia P., Carraro C., Mancino P., Stentella P. HPV-CIN 1 lezyonlarında beta-glukan ile tedavinin etkinliği. Minerva Ginecologica . 2010; 62 (5):389-393. [ PubMed ] [ Google Akademik ]
    13. Stentella P., Biamonti A., Carraro C., et al. Servikal intraepitelyal neoplazide karboksimetil beta-glukanın etkinliği: retrospektif, vaka kontrol çalışması. Minerva Ginecologica . 2017; 69 (5):425–430. doi: 10.23736/S0026-4784.17.04053-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    14. Mitra A., MacIntyre DA, Lee YS, et al. Servikal intraepitelyal neoplazi hastalığının ilerlemesi, artan vajinal mikrobiyom çeşitliliği ile ilişkilidir. Bilimsel Raporlar . 2015; 5 (1) doi: 10.1038/srep16865. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    15. Tsai HT, Tsai YM, Yang SF, et al. Ömür boyu sigara dumanı ve ikinci el duman ve servikal intraepitelyal neoplazm - toplum temelli bir vaka kontrol çalışması. Jinekolojik Onkoloji . 2007; 105 (1):181–188. doi: 10.1016/j.ygyno.2006.11.012. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    16. Min KJ, Lee JK, So KA, Kim MK Koreli kadınlarda pasif sigara içimi ile servikal intraepitelyal neoplazi 1 riski arasındaki ilişki. Epidemiyoloji Dergisi . 2018; 28 (1):48–53. doi: 10.2188/jea.JE20160118. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    17. Hjartaker A., ​​Meo MS, Weiderpass E. Alkol ve jinekolojik kanserler: genel bir bakış. Avrupa Kanser Önleme Dergisi . 2010; 19 (1):1–10. doi: 10.1097/CEJ.0b013e328333fb3a. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    18. Allen NE, Beral V., Casabonne D., et al. Kadınlarda orta düzeyde alkol alımı ve kanser insidansı. Ulusal Kanser Enstitüsü Dergisi . 2009; 101 (5):296–305. doi: 10.1093/jnci/djn514. [ PubMed ] [ CrossRef ] [ Google Akademik ]
    19. Min KJ, Lee JK, Lee S., Kim MK Alkol tüketimi ve viral yük, CIN 1 ile sinerjik olarak ilişkilidir. PLoS One . 2013; 8 (8, makale e72142) doi: 10.1371/journal.pone.0072142. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    20. Tornesello ML, Cassese R., De Rosa N., et al. Güney İtalya'daki Doğu Avrupa ve Batı Afrikalı kadın göçmenlerde insan papilloma virüsü enfeksiyonunun yüksek prevalansı. APMIS . 2011; 119 (10):701–709. doi: 10.1111/j.1600-0463.2011.02784.x. [ PubMed ] [ CrossRef ] [ Google Akademik ]

    Yorum yap


    • #3
      Beta Glukan Nedir? Faydaları Nelerdir?

      İçerisinde bulunduğumuz bu kritik dönemde sağlıklı bir bünyeye ve bağışıklık sistemine sahip olmak oldukça önemli. Bu noktada devreye hastalıkları engellemek için alınan besin takviyeleri giriyor. Bağışıklık sistemini destekleyen, kalp ve damar sağlığını koruyan, kötü kolesterolün düşürülmesine katkıları bulunan beta glukan bu noktada bir adım öne çıkıyor. Peki nedir bu her derde deva beta glukan?

      Beta glukan ekmek mayasının hücre duvarından elde edilen bir besin takviyesi. Kepek, buğday, arpa ve diğer kepekli tahıllar ile maitake ve aslan yelesi mantarları beta glukana kaynaklık eden içerikler arasında sayılıyor. Bu içerikleri meydana getiren hücre duvarlarından beta glukan üretilerek sağlığımıza sayısız yararı olan besin takviyesi elde ediliyor.

      Beta glukanın bağışıklık sistemine, kalp ve damar sağlığına, kolesterol seviyesinin düzenlenmesine katkı sağladığı yapılan araştırmalar neticesinde tespit edildi. Beta glukan, sindirimi kolay bir diyet lifi olması sayesinde kilo kontrolünde ve bağırsak hareketlerinin düzenlenmesinde sıkça tercih ediliyor. Doğal bir besin takviyesi olan beta glukanı günlük beslenme düzeninize dahil ederek siz de bünyenizi destekleyebilirsiniz. Sizin için hazırladığımız rehber ile beta glukanın yararları üzerine kapsamlı bilgi sahibi olmaya hazır mısınız?

      1. Kalp-Damar Sağlığını ve Kolesterolün Düşürülmesini Destekler
      Yapılan araştırmaların sonucuna göre içerisinde yüksek miktarda beta glukan bulunan takviyeler alındığında kalp ve damar sağlığının olumlu yönde etkilendiği görülüyor. İçeriğinde en az 3 mg kadar beta glukan olan yulaflı besinler tüketildiğinde LDL olarak adlandırılan kötü kolesterolün düşürülmesi destekleniyor. Tahıllı gıdalardan elde edilen beta glukan takviyesi ile kolesterolün yüzde 5 oranında düşürülebileceği tahmin ediliyor. (1)

      2. Şeker Hastalığına Karşı Kalkan Oluşturuyor
      Multidisipliner Dijital Yayıncılık Enstitüsü tarafından yapılan bir araştırmaya göre beta glukan takviyesi sayesinde kan şekeri dengesi korunabiliyor. Kan şekeri ve kan basıncının baskılanmasına yardımcı olan beta glukan ile kolesterolün düşürülmesine ilaveten tip 2 diyabete karşı da koruma kalkanı inşa ediliyor. (2)

      3. Kanserli Hücrelerin Yok Edilmesini Destekliyor
      Bilimsel araştırmalar henüz başlangıç aşamasında olsa bile beta glukan takviyesinin kanserli hücreler üzerindeki olumlu etkilerinden söz etmek mümkün. Araştırma sonuçlarına göre beyaz kan hücrelerinin üretimi beta glukan takviyesi ile arttırılabiliyor. Böylece hasarlı dokuların iyileşmesi hızlanırken tümör hücrelerinin de daha hızlı yok edilmesi noktasında vücut destekleniyor.

      Prostat kanseri hakkında Molecular Urology tarafından yayınlanan bilimsel makaleye göre, mantardan üretilen beta glukan takviyeleri ile prostat kanserine sebep olan hücrelerin yok edilme süreci hızlandırılabiliyor.

      4. Cilt Sağlığını Koruyor
      Beta glukan içeren takviyeler ile cilt güzelliğini de desteklemek mümkün. Böylece hassas ciltler dış etmenlerin olumsuzluklarına karşı koruma altına alınabilir. Antioksidan yönünden zengin bir takviye olan beta glukanlar cildin daha kısa sürede yenilenmesini, nem kazanmasını sağlıyor. Aynı zamanda ince çizgilerin oluşmasını önlüyor.

      5. Sindirim Sistemini Rahatlatıyor
      Beta glukan, lifli yapısı sayesinde sindirim sistemini rahatlatmaya yardımcı olan bir gıda takviyesi. Yulaf, kepek, buğday ve çavdar gibi tahıllardan elde edilen beta glukanın bağırsak florası üzerinde rahatlatıcı bir etkiye sahip olduğu ve bağırsaktaki faydalı bakterileri desteklediği biliniyor. Beta glukan takviyesi alarak bağırsak fonksiyonlarınızı destekleyebilir, hazımsızlık şikayetlerinizin ortadan kaldırılması noktasında bedeninize yardımcı olabilirsiniz.

      6. Bağışıklık Sistemini Destekliyor
      Bilimsel araştırmalar beta glukanın bağışıklık sistemini desteklediğini gösteriyor. Beta glukan takviyesi alarak akyuvar hücrelerinizin daha etkin hale gelmesini sağlayabilirsiniz. Böylece vücudunuzun virüs ve bakterilerle olan mücadeleyi kazanmasını kolaylaştırabilirsiniz. Grip, soğuk algınlığı, üst solunum yolu hastalıkları, yorgunluk, enfeksiyon ve alerjiye karşı beta glukan kullanarak bünyenizin koruma kalkanı oluşturmasına yardım edebilirsiniz. (3)

      Bonus: Beta Glukan Takviyesi ile Vücudunuzu Destekleyin
      Siz de beta glukan ihtiyacınızı karşılamak için beslenme programınızda yer alan besinlere ek olarak takviye edici gıdalardan da destek alabilirsiniz. Bu sayede bağışıklık sisteminizin fonksiyonlarını destekleme, cilt sağlığını koruma altına alma, bağırsak fonksiyonlarını düzenleme, kalp ve damar sağlığını destekleme gibi çeşitli noktalarda önemli bir adım atabilirsiniz.

      KAYNAKLAR
      1. K. Esposito, R. Marfella, M. Ciotola et al., “Effect of a Mediterranean-style diet on endothelial dysfunction and markers of vascular inflammation in the metabolic syndrome: a randomized trial,” Journal of the American Medical Association, vol. 292, no. 12, pp. 1440–1446, 2004.
      2. H. Hanai, M. Ikuma, Y. Sato et al., “Long-term effects of water-soluble corn bran hemicellulose on glucose tolerance in obese and non-obese patients: improved insulin sensitivity and glucose metabolism in obese subjects,” Bioscience, Biotechnology and Biochemistry, vol. 61, no. 8, pp. 1358–1361, 1997.
      3. V. Vetvicka, B. Dvorak, J. Vetvickova et al., “Orally administered marine (1 → 3)-β-d-glucan Phycarine stimulates both humoral and cellular immunity,” International Journal of Biological Macromolecules, vol. 40, no. 4, pp. 291–298, 2007.

      Yorum yap


      • #4
        Beta-glukan


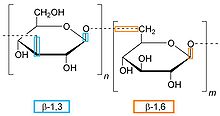
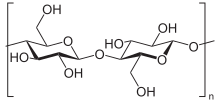
        Farklı beta-glukan bağlantılarının yerleri ve yönlerini gösterren çizim.

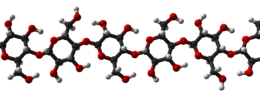
        Bir β-1,4 glukan olan selülozun 3 boyutlu yapısı.

        β-Glukanlar (beta-glukanlar) β-glikozidik bağlarla birbirine bağlanmış D-glukoz monomerlerinden oluşan polisakkaritlerdir. β-Glukanlar, moleküler kütleleri, çözünürlükleri, viskoziteleri ve üç boyutlu şekilleri bakımından büyük çeşitlilik gösterirler. En yaygın olarak bitkilerde selüloz, tahıl tohumlarında kepek, ekmek mayası'nın hücre duvarı, bazı fungus, mantar ve bakterilerde bulunur. Bazı beta-glukan türleri insan beslenmesi için faydalıdır, suda çözünür lif katkısı olarak ve kıvamlandırıcı olarak kullanılırlar. Ancak biracılıkta beta-glukanlar bir sorun sayılır. Genel bakış[değiştir | kaynağı değiştir]


        Glukanlar yapısal bileşen olarak sadece glukoz içeren ve birbirlerine β-glikozidik bağlarla bağlanmış polisakkaritlerdir.

        Şekerlerin standart çiziminde halka oksijeninin iki yanındaki karbonlardaki substituent grupların aynı mı ters yönlü mü olduğuna göre α- ve β-glikozidik bağların ayrımı yapılır. Bir D-şekeri için α-glikozidik bağ, şeker düzleminin altından gelir, öbür karbondaki hidroksil (veya diğer fonksiyonel grup) düzlemin üstüne doğru (yani ters yönde) uzanır, buna karşın α-glikozidik bağ bu düzlemin üst tarafından gelir.

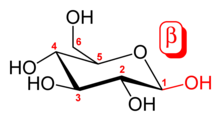
        1,4, ve 6 numaraları her bir glikozidik bağın ucundaki karbon atomlarını tanımlamak için kullanılır. Numarlandırma oksijenin yanından başlar (bakınız glukoz maddesi). Beta-glukan kimyası[değiştir | kaynağı değiştir]


        Glukoz molekülü, karbon numaralandırması ve β doğrultusunu gösterecek çekilde çizilmiştir.

        Tanım gereği, beta-glukanlar birbirine beta tipi glikozidik bağlarlar bağlı D-glukoz polisakkarit zincirleridir. Bu altı kenarlı D-glukoz halkaları halka yapısındaki çeşitli konumlardan birbirine bağlanabilir. Bazı β-glukan bileşikleri belli bir pozisyonda D-glukoz monomerlerinin tekrarından oluşur.

        Ancak, beta-glukanlar nişasta gibi çeşitlilik gösterebilir. Örneğin, nişastada olduğu gibi bir β-glukan molekülü hep aynı pozisyondan bağlanmış D-glukoz moleküllerinden oluşabilir, ama ana D-glukoz zincirinde başka pozisyonlardan glukoz yan dallar da bağlanabilir. Bu yan zincirler β-glukan "omurgasından" örneğin 3 veya 6 pozisyonlarından bağlanabilir. Ayrıca, bu yan zincirler protein gibi başka molekül türlerine de bağlanabilir. Üzerine proteinlerin bağlı olduğu bir β-glukan örneği Polisakkarit-K'dir. Beslenmede[değiştir | kaynağı değiştir]


        Beta-glukan, yulaf veya ekmek mayasından elde edilen bir liftir.

        Yulaf beta-glukanı, suda çözünür bir liftir, yulaf hücrelerin iç kısmındakı duvarlarından elde edilir. LDL kolesterolünü düşürerek koroner kalp yetmezliği riskini ayrıca şeker atağını ve yüksek tansiyonu azaltır.[kaynak belirtilmeli] Hücrelerde bağışıklığı olumlu yönde tetikler.[kaynak belirtilmeli]

        Ekmek mayasından elde edilen beta-glukan ise bağışıklık sistemini güçlendirdiğini işaret eden birçok araştırmalar mevcuttur.[kaynak belirtilmeli]

        Tahıl temelli beta-glukanlar suda çözülme özelliklerinden dolayı insan beslenmesinde çözünür lif desteği olarak önemli rol oynarlar. Tahıllar arasında en yoğun miktarada beta-glukanı yulaf içermektedir. Yulaf beta-glukanının, insan sağlığına üç ayrı olumlu etkisi bulunmaktadır: kolesterolü düşürme, kan şekerini dengeleme ve mide ve bağırsak çalışmasını düzenlemeye yardımcı olur.[kaynak belirtilmeli]

        Suda çözünmeyen, ekmek mayası veya mantardan elde edilen beta-glukanların molekül yapıları suda çözünenlerden farklıdır. Bu nedenle suda çözülen ve çözülmeyen beta-glukanların kullanım alanları, etki mekanizmaları ve genel biyolojik aktiviteleri arasında büyük farklılık vardır. Suda çözünmeyen beta-glukanların bağışıklık sistemi üzerindeki etkisinden faydalanılırken, suda çözünenler, sindirim sisteminde oluşturdukları bal kıvamındaki jel yapısından dolayı kolesterol ve kan şekerini olumlu yönde etkileyerek kalp damar hastalıkları riskini azaltırlar.[kaynak belirtilmeli]

        Yulaf beta-glukanının kolesterol ve glisemik indeks düşürücü etkisi ile sindirim sistemi üzerindeki olumlu etkileri yüzün üzerinde yayınlanmış bilimsel çalışmada gösterilmiştir.[kaynak belirtilmeli]

        Beta-glukan'ın sağlık üzerindeki olumlu etkileri ABD'de FDA (Food Drug Administration) ve Avrupa'da EFSA (European Food Safety Administration) gibi gıda denetim kuruluşları tarafından onay almıştır.[kaynak belirtilmeli] Kaynakça[değiştir | kaynağı değiştir]
        • Saltzmann, E., Moriguti, J.C., Das, S.D., Corrales, A., Fuss, P., Greenberg, A.S., and Roberts, S.B. "Effects of a cereal rich in soluble fiber on body composition and dietary compliance during consumption of a hypocaloric diet." - J. Am. Coll. Nutr. 20:50-57 2001
        • Ludwig, D. S. "Dietary glycemic index and obesity." Am. Soc. Nutr. Sci. 130:280S 2000
        • Johansen, J.N., et al - 1996
        • Demark-Wahnefried, W. et al - 1991
        • Krotkiewski, M et al - 1985
        • Battilana et al. "Mechanism of action of beta-glucan in postprandial glucose metabolism in healthy men" - Eur J Clin Nutr 2001
        • Wood et al. "Evaluation of role of concentration and molecular weight of oat beta-glucan in determining effect of viscosity on plasma glucose and insulin following an oral glucose load." - Brit J Nutr 2000
        • Würsch & Pi-Sunyer "The role of viscous soluble fiber in the metabolic control of diabetes" - Diabetic Care 1997
        • Lia Amundsen et al. "Postprandial lipemia in relation to sterol and fat excretion in ileostomy subjects given oat-bran and wheat test meals" - Am J Clin Nutr 1997
        • Lia Amundsen et al. "Oat beta-glucan increases bile acid excretion and fiber-rich barley fraction increases cholesterol excretion in ileostomy subjects" - Am J Clin Nutr 1995
        • Marlett et al. "Mechanism of serum cholesterol reduction by oat bran" - Hepatology 1994

        Yorum yap


        • #5
          Bağışıklık Sistemi ve Beta-Glukan

          Son yıllarda adını sıkça duyduğumuz bağışıklık sisteminin destekçisi olarak nitelendirilen Beta-Glukan molekülü mevsimsel değişiklikle birlikte artan salgın hastalıklar döneminde yine popüler oldu. Günümüze kadar 8000 makale ve araştırmaya konu olan Beta-Glukan sık enfeksiyon geçiren, uzun süre antibiyotik alma ihtiyacı olan çocuk veya erişkinlerde immün sisteminin aktive edilmesi, güçlendirilmesi için kullanıldığında antibiyotik ihtiyacında ve enfeksiyon sıklığında ciddi azalma meydana getirmektedir.

          Çocukların okul, yetişkinlerin yoğun iş stresi kısır döngüsüne girdiği mevsimsel geçiş dönemlerinde bağışıklık sistemini güçlendirmenin formülleri aranmaya başlanır. Bu sırada sık enfeksiyon geçiren, sık antibiyotik kullanmak zorunda kalan, rutin kullanım dozlarında çok yeterli yanıt alınamayan vakalarda Beta-Glukan’ın iyi bir destek olabilmektedir. Çocuklar toplum içine girdikleri ilk yıl; anaokulu, kreş, ilkokul birinci sınıf olabilir sık enfeksiyon geçirme riski ile karşı karşıya kalır. Kaldı ki 60 aylık çocukların immün sistemlerinin dışarıdan toplumsal kaynaklı enfeksiyon faktörlerine çok hazırlıklı olduğu söylenemez. İmmün sistemleri birçok virüsü, toplumsal kaynaklı bakteriyi tanımadığı için çocuklar karşıdan gelen bu tür enfeksiyon faktörlerine karşı abandone olup, sıkıntıya girebilir. Sık enfeksiyon geçirmek, sık antibiyotik almak, sık kulak iltihabı yaşamak, sık üst solunum yolu enfeksiyonu olmak sonrasında zatüre-pnömöni gibi tablodan tabloya geçen vakalar olabilir. Bu tablolar ilk okul yılı içinde olur. Sonraki yıllarda enfeksiyon sıklıkları gerçek bir mmün yetmezliği olmayan çocuklarda ciddi oranda azalır. Çünkü çocuk toplum kaynaklı enfeksiyonları tanır hale gelir.

          Beta Glukan Molekülü Nedir?

          Beta-Glukan'ın immün sistemini güçlendirdiğini, desteklediğini gösteren hem deney ortamında hem de insan vücudunda gözlemsel olarak yapılmış çalışmalar bulunmaktadır. İyi kanıt düzeylerine sahip çift kör plasebo kontrollü birçok çalışmada etkin sonuçlar elde edilmiştir. Şu anda piyasada FDA’ den onay almış Beta-Glukan genel olarak güvenli bir molekül olarak tanımlanmıştır. Aynı zamanda Beta-Glukan’ ın klinik olarak etkili olduğuna dair de güncel 7500-8000 çalışmada insan vücuduna bir toksik etkisi olmadığı görülmüştür. Kanser hastalarında kemoterapiye yardımcı olarak kullanıldığını ve iyi sonuçlar alındığını gösteren, radyoterapinin yarattığı sıkıntılar, yıkıcı, kırıcı, dökücü etkileri çok daha hızlı topladığına dair de çok sayıda makaleler bulunmaktadır. Preklinik çalışmada alerjik hastalarda çok faydalı olduğunu gördük. Preklinik çalışmada iki grup oluşturuldu. Bir gruba Beta-Glukan bir gruba plasebo verdik ki bu çalışmada çift kör plasebo kontrollüydü; yani "tıbben bir molekül etkili midir-değil midir?" diye net sonuçlar alacağınız metodoloji ile yapılmış bir çalışmaydı. Beta-Glukan verdiğimiz alerjik rinit vakalarında, burun içerisindeki alerji tarzındaki proteinleri (sitokinleri) üreten Th2 hücresi dediğimiz hücreleri anti-alerjik mekanizmaları çalıştıran sitokinleri üreten ve Th2 hücreleri baskılayan Th1 hücre fonksiyonlarına doğru döndürdüğünü tespit ettik. Bahsi geçen Th1 hücresi immünolojik sistemde iyi bir anti-viral yanıt; iyi bir anti-kanser yanıt ile viral enfeksiyonlar veya kanserle savaşımızda temel hücrelerden birisidir. Aynı zamanda hücre içinde yaşayan bakterilere iyi bir örnek olan tüberküloza karşı da iyi ve güçlü bir Th1 cevabı gerekmektedir. Benim çalışmalarımdan elde edilen sonuç şu ki: Th2 aktif olan alerji hastalarının hücreleri Beta-Glukan’ la Th1’ e doğru kaydı ya da Th1 fonksiyonlarını daha iyi gösterebildi. Bu da klinikte bizim alerji vakalarında Beta-Glukan ile sağlanan iyilik ve viral enfeksiyona yakalanma sıklığındaki azalmayı açıklamaktadır.

          Çocuklarda Beta-Glukan Ne Zaman ve Nasıl Kullanılır?

          FDA’den güvenilir onayı alan Beta-Glukan kullanımında bir sakınca yoktur. Kış aylarıyla birlikte sıkıntılı enfeksiyon dönemlerine yaklaşırken bağışıklık sistemini desteklemek üzere Beta-Glukan kullanılabilir. Burada dikkat edilecek nokta: sık hastalanan, sık enfeksiyon olan kişilerde bunun gerçek sebebinin araştırılmasıdır. Öncelikle immün yetmezliği olup olmadığı sorgulanmalıdır. Gerçek immün yetmezliği ya da bir antikor eksikliği varsa tedavisi bellidir. Antikoru yerine koymak zorundasınız veya kemik iliği transplantasyonu yapmak zorundasınız. Ancak ortada kalan bir grup var. Gerçekten immün yetmezliği olduğu biyokimyasal ve immünolojik kriter ile laboratuvar şartlarında kanıtlanamıyor. İmmün yetmezliği yok ama çocuk tam olarak sağlıklı değil. Herkes yılda bir-iki kere enfeksiyon geçirebilir. Bunda bir sıkıntı yok ama yılda altı- sekiz- on kere orta kulak iltihabı gibi enfeksiyon geçiriliyorsa burada problem araştırılmalıdır. Sık pnömoni-zatüre sebebiyle hastanede yatan, uzun süre antibiyotik alma ihtiyacı olan çocuklar var. Bu çocukların esasında immün sisteminin birazcık aktive edilmesi, birazcık güçlendirilmesi gerekiyor. Bu vakalarda Beta-Glukan molekülü kullandıktan sonra ilaç sarfiyatında ciddi bir azalma, ilaç kullanım ihtiyacında gerçekten belli bir düşme ve enfeksiyon sıklıklarında gözle görülür azalma olduğu saptanmıştır. Bunun dışında çocuğun yaşam kalitesi ile birlikte ailenin de yaşam kalitesi de yükselir. Ders başarısı artar.

          Bilimsel Deneylerde Beta-Glukan Nasıl Sonuçlar Verdi?

          Beta Glukan’ın immünolojik olarak etkileri kanıtlanmıştır. Virüs, bakteri ya da mantar vücudunuza girdiğinde bunu ilk karşılayan doğal bağışıklık sistemidir. Doğal immün cevapta nonspesifik yani özgül olmayan en çalışkan eleman makrofajdır. Gider yabancıyı tanır, içine alır ve içinde enzimatik fonksiyonlarla yok etmeye çalışır. Normal bir savunma mekanizmasının başlangıcı bu şekilde çalışır. Makrofajın bunu yapabilmesi için gerçekten aktif, yürüyebilir, yalancı ayakçıklar çıkarabilir, yabancı virüs ya da bakteri yani yabancı materyali içine alıp içinde enzimatik aktivite başlatabilmesi gerekir. Beta-Glukan’ın tüm bu aktiviteleri makrofaj üzerinde laboratuvar şartlarında etkilediği daha düzgün çalıştırdığı, daha iyi aktivasyona geçirdiği gösterilmiştir.

          Bağışıklık Sistemini Güçlendirmek Mümkün mü?

          Dengeli ve düzenli beslenmek, dinlenmek, uykuya dikkat etmek, vakit buldukça spor yapmak, stresten uzak durmak bağışıklık sisteminin ayakta durmasını sağlar. Ancak; bunun dışında "dışarıdan bir takım etkenlerle immün sistemini güçlendirmek mümkün mü? İmmün sistem dışarıdan alınacak takviye ile güçlenir mi?" Bilim yıllardır bu konuyla uğraşıyor. Bugüne kadar çok sayıda tıbbi katkı maddesi, ilaç olabilecek türden maddelerden bahsedildi. Hala da çalışmalar devam ediyor. Buradaki temel sorular şunlardır: "Dışarıdan gelen enfeksiyon ajanlarına karşı immün sistem nasıl daha dik ve sağlıklı olabilir, kişilerin enfeksiyonlardan nasıl daha az etkilenmesi sağlanır?. Hastalığın tedavisinde kullanılacak antibiyotik, antiviral-ya da başka problemler gelişirse kanser gibi- kemoterapötik ilaçların alınması azaltılabilir mi?" Biliyoruz ki tüm ilaçlar normal şartlarda toksik etkili kimyasal maddelerdir. Tıpta ilaçlar fayda/zarar oranına göre kullanılırlar. Açıklamak gerekirse; antibiyotik ve antivirallerin belli bir kullanım süresi ve dozajı vardır. İnsanlarda etkili olduğu kanıtlanmış yan etkisi minimalize edilmiş- tolere edilebilecek-dozlarda bu ilaçlar kullanılır. Ancak bazı vakalar var ki; bağışıklık sistemi biraz zorlandığında, sıkıntıya düştüğünde (ya da gerçekten bağışıklık yetmezliği olanlar) rutin tedavi dozlarına ve tedavi sürelerinde normalde uyulması gereken süre ve miktarda alınan ilaca yeterli yanıt veremez. Ya da yanıt aldıktan birkaç gün sonra hasta aynı klinik tabloyla tekrar karşınıza gelebilir. "Bu tür vakalarda özellikle immün sistem desteklenmeli midir? Desteklenirse daha iyi sonuç alınabilinir mi?" şeklinde çok sayıda çalışma-araştırma yapılmış. Sonuçta bazı etkili moleküller saptanmış; bu moleküllerin hastada daha az antibiyotik kullanımına, hastane yatış süresinin kısalması ya da hastaneye hiç gerek kalmamasına, cost-effect yani parasal etkisinin daha az maliyetle tedaviye katkı sağladığı görülmüştür. Ayrıca hastanın klinik tablosunda normal doz ve zamanda iyileştiği tespit edilmiştir.

          Kullanılan Miktara Dikkat Edilmesi Gerekiyor

          En az 100 mg-200 mg gibi rutine göre biraz yüksek dozlar kullanılmalıdır. Literatüre baktığımızda aşağı yukarı 600 mg’lık dozların Beta-Glukan açısından çok daha etkili olduğunu gösteren yayınlar var. Konuyu değerlendiren çalışmalara baktığınızda 100 mg’lık dozların etkili olacağından bahsediliyor. Herhangi bir alanda klinik ihtiyacına göre kullanabilirsiniz ama 100 mg altında ki dozlar etkili mi? Birkaç tane çalışma var bununla ilgili;ancak, yeterince etkili olmadığını görüyoruz. Ben kendi adıma gerek çocuk gerekse erişkinde en az 100 mg kullanıyorum. Akut enfeksiyon veya ani başlayan enfeksiyon tablosu varsa makrofaj denilen hücreler, nötrofil denilen hücreler, bağışıklık sistemi hücreleri çok daha hızlı ve etkin hareket etmeleri gerektiği için klinik ihtiyaca göre iyi sonuç almak için daha yüksek dozlara çıkıyorum.

          Bağışıklık Sistemini Devamlı Uyarmak Doğru mu, Tehlike Yaratır mı?

          Enfeksiyon açısından riskli sezonlar vardır. Mevsim değişikliği ve kış boyu fizyolojik üst solunum yolunda bakteri kolonizasyona hazır ortam olması, dönemsel üst ve alt solunum yolu enfeksiyonlarında artışa sebep olur. Ben klinik kullanımımda yaz aylarının sonlarından, kış ayları süresince ilkbahara gelinceye kadar Beta-Glukan başlatıyorum. Bu, enfeksiyonlardan korunmak açısından düşündüğümüzde normal, rutinde de kullanılması gereken mantıklı süreç. Ama onun dışında bazı kanser vakalarında da destek tedavisi olarak da kullanılıyor. Burada nonspesifik bağışıklık sistemi hücrelerinizin devamlı aktif ve güçlü olması gerekiyor. Yani hastalık süresince belki hastalığı yeninceye kadar, yok edinceye kadar ya da yaşam sürdükçe bu hücrelerin, antikanser hücrelerin ya da immün aktif hücrelerin mutlaka aktive tutulması gerekiyor. Bu mantıkla baktığınız zaman, devamlı kullanmak gerekiyor. Bağışıklık sistemini bu kadar aktive edersek bir tehlikesi var mı? Makrofajı, nötrofilleri ve diğer immün aktif hücreleri aktive ederseniz, kendi kendinize saldırıya sebep olabilirsiniz. Bununla ilgili laboratuvar şartlarında ve insan üzerinde yapılan çalışmalarda Beta-Glukan’ın oto-immüniteyi davet etmediği saptanmıştır. Beta-Glukan; immün sistemini aktif tutmak, profilaktik dediğimiz-öncü olarak hastalık gelmeden korunma amacıyla kullanabilecek moleküllerden bir tanesidir. Hastayken de hasta olmadan önce de koruyucu olarak kullanılabilir. Bu tamamen kişinin tercihidir..

          Doğal Yolla Beta-Glukan Almak Mümkün mü?

          Yulaf, ekmek gibi besinlere baktığınızda Beta-Glukan içeriğine sahip olduğunu görüyoruz. Beta-Glukan molekülünün yapısal olarak çözülebilen diğeri de çözünmez formu olmak üzere iki formda bulunur. Yulaf, ekmek gibi gıdalarda karşılaştığımız Beta-Glukan’ın çok büyük bir kısmı çözülebilir Beta-Glukan’dır. Bunun immünolojik etkileri çözünemez forma göre çok aşağıda kalır, çok etkili olmaz. Dolayısıyla bize çözünmez form lazım. Ayrıca bu molekül 1-3, 1-6 D Beta-Glukan formülasyonunda olmalıdır. Yalnız 1-3 Beta-Glukan formuna göre 1-3, 1-6 Beta-Glukan fromunun çok daha etkili bir immün sistem güçlendirici olduğu bilinmektedir. Gıda takviyesi şeklinde kullanılabilecek Beta-Glukan’nın büyük oranda çözünmezdir.

          Yorum yap


          • #6
            Bağışıklık Sistemi Güçlendirme, Beta Glukan Mucizevi Faydaları Nelerdir ?


            β-glukanın insan bağışıklık ve kanser hücreleri üzerindeki etkileri

            Godfrey Chi-Fung Chan , 1 Wing Keung Chan , 1 ve Daniel Man-Yuen Sze 2
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .

            Soyut
            Kanser hastaları arasında tıbbi bitkilerin reçetesiz kullanımı tüm dünyada yaygındır. Çoğu bitki özünün iddia edilen anti-kanser etkileri, esas olarak in vitro veya in vivo hayvan deneylerinden elde edilen çalışmalara dayanmaktadır. Mevcut bilgiler, bu bitki özlerinin biyolojik etkilerini sitotoksik veya immünomodülatör mekanizmalar yoluyla sergilediklerini göstermektedir. Bitkisel ürünlerin bağışıklık etkilerinden sorumlu olan aktif bileşiklerden biri, β-glukanlar olarak bilinen karmaşık polisakkaritler formundadır. β-glukanlar, hem bakteri hem de mantar hücre duvarlarında her yerde bulunur ve anti-mikrobiyal bağışıklık tepkisinin başlatılmasında rol oynar. in vitro dayalıβ-glukanlar, Dectin-1, kompleman reseptörü (CR3) ve TLR-2/6 dahil olmak üzere çeşitli bağışıklık reseptörleri üzerinde etki eder ve makrofajlar, nötrofiller, monositler, doğal öldürücü hücreler ve dendritik hücreler dahil olmak üzere bir grup bağışıklık hücresini tetikler. Sonuç olarak, hem doğuştan gelen hem de adaptif yanıt β-glukanlar tarafından modüle edilebilir ve ayrıca opsonik ve opsonik olmayan fagositozu geliştirebilirler. Hayvan çalışmalarında, oral uygulamadan sonra, spesifik omurga 1→3 lineer β-glikosidik β-glukan zinciri sindirilemez. Çoğu β-glukan proksimal ince bağırsağa girer ve bazıları makrofajlar tarafından yakalanır. Hücreler içinde içselleştirilir ve parçalanırlar, daha sonra makrofajlar tarafından kemik iliğine ve endotelyal retiküler sisteme taşınırlar. Küçük β-glukan parçaları sonunda makrofajlar tarafından salınır ve diğer bağışıklık hücreleri tarafından alınır ve çeşitli bağışıklık tepkilerine yol açar. Bununla birlikte, farklı boyutlarda ve dallanma modellerinde β-glukanlar, önemli ölçüde değişken bağışıklık gücüne sahip olabilir. β-glukanların etkilerini klinik olarak araştırmak istiyorsak, uygun β-glukanların dikkatli seçimi esastır. Şimdiye kadar, kanser hastaları arasında saflaştırılmış β-glukanların etkinliğini değerlendirmek için iyi kalitede klinik deney verileri mevcut değildir. Gelecekteki çabalar, β-glukanlar veya β-glukanlar içeren bileşiklerin gerçek klinik etkinliğini doğrulamak için iyi tasarlanmış klinik deneyler yapmaya yönlendirmelidir. β-glukanların etkilerini klinik olarak araştırmak istiyorsak, uygun β-glukanların dikkatli seçimi esastır. Şimdiye kadar, kanser hastaları arasında saflaştırılmış β-glukanların etkinliğini değerlendirmek için iyi kalitede klinik deney verileri mevcut değildir. Gelecekteki çabalar, β-glukanlar veya β-glukanlar içeren bileşiklerin gerçek klinik etkinliğini doğrulamak için iyi tasarlanmış klinik deneyler yapmaya yönlendirmelidir. β-glukanların etkilerini klinik olarak araştırmak istiyorsak, uygun β-glukanların dikkatli seçimi esastır. Şimdiye kadar, kanser hastaları arasında saflaştırılmış β-glukanların etkinliğini değerlendirmek için iyi kalitede klinik deney verileri mevcut değildir. Gelecekteki çabalar, β-glukanlar veya β-glukanlar içeren bileşiklerin gerçek klinik etkinliğini doğrulamak için iyi tasarlanmış klinik deneyler yapmaya yönlendirmelidir.

            Tanıtım
            Kanser hastalarının önemli bir kısmı, geleneksel anti-kanser tedavilerini alırken tamamlayıcı tıbbi tedaviler almaktadır [ 1 - 6 ]. Bunlar arasında, Ganoderma lucidum gibi bitki özleri, özellikle Doğulular arasında tüketilen en yaygın yöntemlerden biridir [ 7 - 10 ]. Bu bitki özlerinin kansere karşı etkisinden sorumlu olduğu öne sürülen iki mekanizma; biri doğrudan sitotoksik etki yoluyla, diğeri ise dolaylı olarak immünomodülatör etki yoluyladır [ 11 , 12 ]]. Vinkristin, taksol ve etoposid gibi şu anda kullanımda olan birçok sitotoksik kemoterapötik ajan, orijinal olarak bitkilerden saflaştırılır. Öte yandan, immünomodülatör işlevleri olan şifalı otlar, esas olarak ticari sektörler tarafından savunulmaktadır ve çoğu, doğrudan tezgahtan veya internetten satın alınabilir. Ne yazık ki, bu bitki grubunun gerçek yararlılığını ve aktif bileşenlerini araştırmak için organize çabalar eksiktir. Son yıllarda, bu bitkilerin çoğunun immünomodülasyonundan sorumlu olan aktif bileşenlerden birinin, "β-D-glukan" olarak bilinen veya basitçe β-glukan olarak adlandırılan karmaşık polisakkaritlerin bir formu olduğu bulunmuştur [ 8 , 13 ]. β-glukanların reseptörleri ve etki mekanizmaları yakın zamanda in vitro olarak ortaya çıkarılmıştır.ve in vivo hayvan deneyleri. β-glukanlar ucuz olduklarından ve geçmiş kayıtlara dayalı olarak iyi bir güvenlik marjına sahip olduklarından, potansiyel terapötik değerleri daha fazla araştırmayı hak ediyor. Burada β-glukanların in vitro ve in vivo hayvan biyolojik çalışmaları, özellikle bağışıklık ve anti-kanser mekanizmaları hakkındaki literatürü ve deneyimlerimizi gözden geçirdik.

            β-glukanın fiziksel ve kimyasal özellikleri
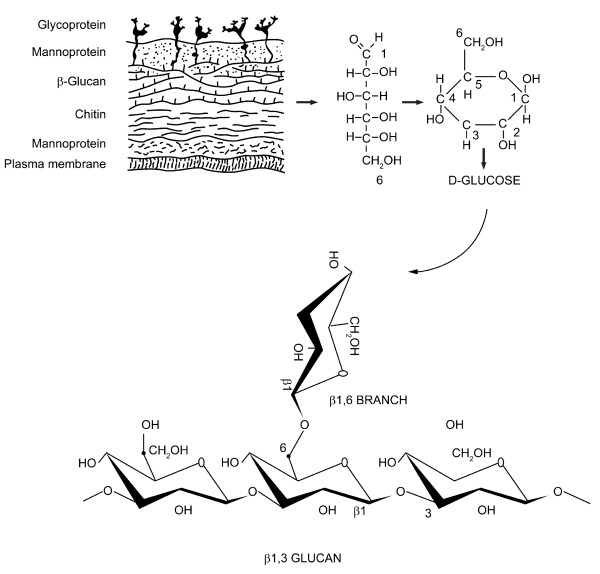
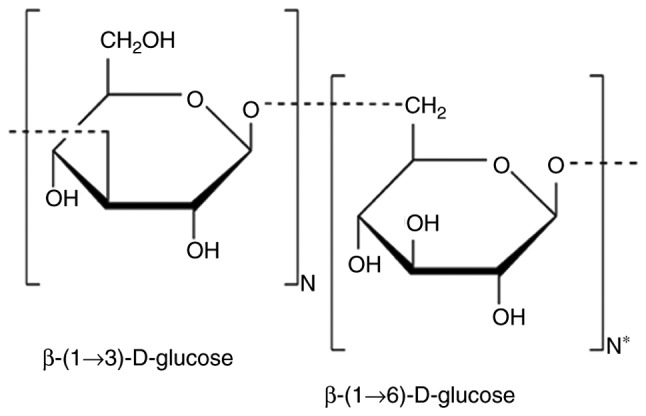
            β-glukanlar, bakteri ve mantarların hücre duvarında bulunan polisakkaritlerin en bol formlarından biridir. Tüm β-glukanlar, 1 → 3 lineer β-glikosidik zincir çekirdeği ile birbirine bağlanan glikoz polimerleridir ve uzunlukları ve dallanma yapıları [ 14 ] (Şekil ) ile birbirlerinden farklıdırlar.​(Şekil 1).1). Glikozidik zincir çekirdeğinden türetilen dallar oldukça değişkendir ve 2 ana dallanma grubu 1→4 veya 1→6 glikozidik zincirlerdir. Bu dallanma atamaları türe özgü görünmektedir, örneğin, mantarın β-glukanları 1→6 yan dala sahipken, bakterilerinkiler 1→4 yan dala sahiptir. Dallanmanın hizaları belirli bir oranı takip eder ve dallardan (ikincil dallardan) kaynaklanabilir. Sulu çözeltide, β-glukanlar üçlü sarmal, tek sarmal veya rastgele sarmallar halinde konformasyonel değişime uğrarlar. β-glukanların bağışıklık fonksiyonları, görünüşe göre onların konformasyonel karmaşıklığına bağlıdır [ 15 ]. Daha yüksek derecede yapısal karmaşıklığın, daha güçlü immünomodülatör ve anti-kanser etkileri ile ilişkili olduğu öne sürülmüştür.

            Şekil 1
            β-glukan, mantar hücre duvarının temel bileşenlerinden biridir . Fungal β-glukan'ın temel alt birimi, 1→6 glikozidik dallı 1→3 glikosidik zincir ile birbirine bağlı β-D-glukozdur. Çeşitli mantarlardan elde edilen β-glukanın uzunluğu ve dalları oldukça farklıdır.

            Araştırma amacıyla, β-glukanların bileşimi veya yapısal bilgileri, sıvı kromatografi/kütle spektrometrisi (LC/MS)[ 16 ], yüksek performanslı sıvı kromatografisi (HPLC)[ 17 ] ve daha az sıklıkla X dahil olmak üzere çeşitli yöntemlerle değerlendirilebilir. -ışın kristalografisi [ 18 ] veya atomik kuvvet mikroskobu [ 19]. Bununla birlikte, bu teknik yöntemlerin çoğu sıkıcı ve niceliksel nitelikte olmaması nedeniyle, bir tarama aracı olarak rutin olarak uygulanamazlar. β-glukan içeriklerinin incelenmesinde daha az karmaşık olan diğer teknikler arasında fenol-sülfürik asit karbonhidrat tahlili, anilin mavisi boyama yöntemi ve ELISA bulunur. Kimyasal modifikasyon her zaman doğal konformasyonda değişikliklere neden olduğundan, bu yöntemlerin çoğu yapı ve biyoaktivite arasındaki gerçek ilişkiyi yansıtamaz. Bunlar arasında, anilin mavisi boyama yöntemi, boyama işlemi sırasında β-glukanların doğal yapısını koruma yeteneğinden dolayı β-glukan taraması için nispeten basit bir yöntemdir. Ayrıca β-glukanlar için iyi bir özgüllüğe sahiptir, ancak sınırlaması, dalları değil, sadece çekirdek 1→3 lineer glikozidik zinciri ölçebilmesidir.

            Endotoksin kontaminasyonu, β-glukanın güvenliğini ve potansiyel biyolojik etkisini etkileyen bir diğer önemli konudur. Lipopolisakkarit (LPS), Gram negatif bakteri hücre duvarı içinde bulunan bir endotoksindir ve lipid A, çekirdek ve polisakkarit zinciri olmak üzere üç ana kısımdan oluşur [ 20 ]. Bunlar arasında, lipid A'nın bir bağışıklık tepkisini başlatabilen ana bileşen olduğu bulundu. LPS kontaminasyonu, β-glukanların kültürü veya hazırlanması sırasında meydana gelebilir. LPS en güçlü bağışıklık uyarıcılarından biri olduğundan ve kontaminasyonu bağışıklık testlerinde yanlış pozitif sonuçlara yol açabileceğinden, tavşan pirojen testi veya modifiye limulus amebosit lizat (LAL) testi ile değerlendirilebilen LPS miktar tayini yapılmalıdır. eksik faktör G [ 21 ] ile.


            β-glukanın Farmakodinamiği ve Farmakokinetiği
            Çoğu β-glukan sindirilemeyen karbonhidratlar olarak kabul edilir ve bağırsak mikrobiyal florası tarafından çeşitli derecelerde fermente edilir [ 22 - 24 ]. Bu nedenle, immünomodülatör özelliklerinin kısmen mikrobiyal bağımlı bir etkiye atfedilebileceği tahmin edilmektedir. Bununla birlikte, β-glukanlar aslında doğrudan bağışıklık hücrelerinin spesifik reseptörlerine bağlanabilir, bu da mikrobiyal bağımsız bir immünomodülatör etki olduğunu düşündürür [ 25 ]. β-glukanların farmakodinamiği ve farmakokinetiği, hayvan ve insan modellerinde incelenmiştir.

            Hayvan Çalışmaları
            Enteral olarak uygulanan radyoaktif etiketli β-glukanın emilimi ve doku dağılımının değerlendirilmesi için bir emen sıçan modeli kullanılarak yapılan çalışmada, β-glukanın çoğunluğunun uygulamadan 5 dakika sonra mide ve duodenumda tespit edildiği bulunmuştur [ 26 ]. Bu miktar ilk 30 dakikada hızla azaldı. Önemli miktarda β-glukan, alımdan kısa bir süre sonra proksimal bağırsağa girdi. Proksimal bağırsaktan geçişi, ileumda eşzamanlı bir artış ile zamanla azaldı. Düşük sistemik kan seviyelerine (%0.5'ten az) rağmen, hümoral ve hücresel bağışıklık tepkileri açısından önemli sistemik bağışıklık düzenleyici etkiler gösterilmiştir.

            3 farklı yüksek oranda saflaştırılmış ve önceden karakterize edilmiş β-glukanın intravenöz uygulamasını takiben farmakokinetik, indirgeme ucunda bir florofor ile kovalent olarak etiketlenmiş karbonhidratlar kullanılarak incelenmiştir. Moleküler boyuttaki, dallanma sıklığındaki ve çözelti yapısındaki değişikliklerin, eliminasyon yarı ömrü, dağılım hacmi ve klirens üzerinde bir etkisi olduğu gösterilmiştir [ 27 ].

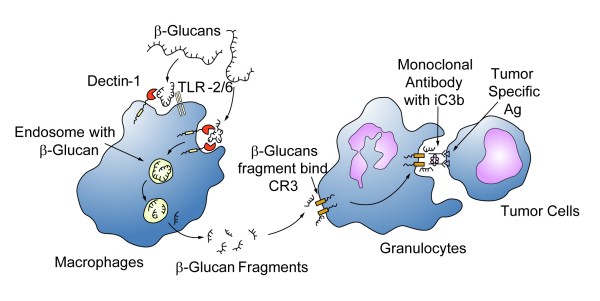
            Yuttuktan sonra β-glukanların düşük sistemik kan seviyesi, β-glukanların farmakodinamiğinin tam resmini yansıtmaz ve in vivo etkilerini dışlamaz. Cheung-VKN ve ark . in vivo olarak oral alımlarını ve işlenmesini izlemek için floresein ile etiketlenmiş β-glukanlar. Oral olarak verilen β-glukanlar Dectin-1 reseptörü aracılığıyla makrofajlar tarafından alındı ​​ve ardından dalak, lenf düğümleri ve kemik iliğine taşındı. Kemik iliği içinde, makrofajlar büyük β-1,3-glukanları daha küçük çözünür β-1,3-glukan fragmanlarına indirgedi. Bu fragmanlar daha sonra marjinal granülositlerin kompleman reseptörü 3 (CR3) yoluyla alındı. CR3'e bağlı β-glukan-floresein içeren bu granülositlerin, monoklonal antikorla kaplanmış tümör hücreleri gibi bir kompleman aktivasyon bölgesine alındıktan sonra inaktive edilmiş kompleman 3b (iC3b)-opsonize tümör hücrelerini öldürdüğü gösterilmiştir [ 28 ] (Şekil​(Şekil 2).2). Ayrıca intravenöz uygulanan çözünür β-glukanların dolaşımdaki granülositler üzerindeki CR3'e doğrudan iletilebileceği de gösterilmiştir.

            şekil 2
            β-glukanın bağışıklık hücreleri üzerindeki alımı ve müteakip etkileri . β-glukanlar, makrofajlar tarafından Dectin-1 reseptörü aracılığıyla TLR-2/6 ile veya TLR-2/6 olmadan yakalanır. Büyük β-glukan molekülleri daha sonra içselleştirilir ve makrofajlar içinde daha küçük boyutlu β-glukan fragmanlarına bölünür. Kemik iliğine ve endotelyal retiküler sisteme taşınırlar ve daha sonra serbest bırakılırlar. Bu küçük β-glukan fragmanları sonunda kompleman reseptörü (CR)-3 aracılığıyla dolaşımdaki granülositler, monositler veya makrofajlar tarafından alınır. Bağışıklık tepkisi daha sonra açılacaktır, eylemlerden biri monoklonal antikorla etiketlenmiş tümör hücrelerinin fagositozudur.

            Ayrıca, Rice PJ ve ark. laminarin ve skleroglukan gibi çözünür β-glukanların, bağırsak epitel hücreleri ve bağırsakla ilişkili lenfoid doku (GALT) hücreleri tarafından doğrudan bağlanabileceğini ve içselleştirilebileceğini gösterdi [ 29 ]. Makrofajdan farklı olarak, çözünür β-glukanın bağırsak epitel hücreleri tarafından içselleştirilmesi Dectin-1'e bağlı değildir. Bununla birlikte Dectin-1 ve TLR-2, GALT hücreleri tarafından çözünür β-glukan alımından sorumludur. Bu çalışmanın bir diğer önemli bulgusu, emilen β-glukanların, farelerin bakteriyel enfeksiyon tehdidine karşı direncini artırabilmesidir.

            İnsan Çalışmaları
            β-glukanların insanda alındıktan sonra etkilerine nasıl aracılık ettiği henüz tanımlanmamıştır. Bir faz I'de, çözünür formdaki oral β-glukanların güvenlik ve tolere edilebilirliğinin değerlendirilmesi için çalışma [ 30 ]. Ardışık 4 gün boyunca sırasıyla farklı dozlarda (100 mg/gün, 200 mg/gün veya 400 mg/gün) β-glukanlar verildi. İlaçla ilgili herhangi bir yan etki gözlenmedi. Bununla birlikte, serumdaki β-glukanların tekrarlanan ölçümleri, oral uygulamayı takiben ajanın sistemik absorpsiyonunu göstermedi. Bununla birlikte, tükürükteki immünoglobulin A konsantrasyonu, 400 mg/gün kolu için önemli ölçüde arttı, bu da sistemik bir bağışıklık etkisinin ortaya çıktığını düşündürdü. Bu çalışmanın bir sınırlaması, serum β-glukan tayininin düşük duyarlılığıdır.

            Özetle, çoğunlukla hayvan verilerine dayalı olarak, β-glukanlar proksimal ince bağırsağa hızla girer ve oral uygulamadan sonra makrofajlar tarafından yakalanır. β-glukanlar daha sonra içselleştirilir ve daha küçük boyutlu β-glukanlara parçalanır ve kemik iliğine ve endotelyal retiküler sisteme taşınır. Küçük β-glukan parçaları daha sonra makrofajlar tarafından salınır ve dolaşımdaki granülositler, monositler ve dendritik hücreler tarafından alınır. Bağışıklık tepkisi daha sonra ortaya çıkacaktır. Bununla birlikte, önerilen mekanizmaların çoğu in vitro ve in vivo hayvan çalışmalarına dayandığından bu bilgiyi dikkatli bir şekilde yorumlamalıyız. Aslında, şu anda insan deneklerde meydana gelen bu varsayılan etki mekanizmaları ve farmakokinetik için çok az kanıt var veya hiç yok.

            immünomodülatör ajan olarak β-glukanlar
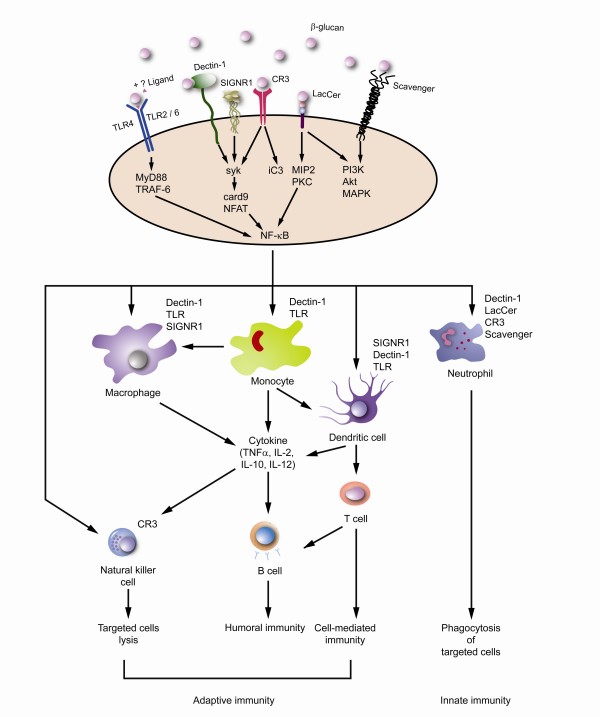
            Mevcut veriler, β-glukanların hem doğal hem de adaptif bağışıklık üzerinde etkileri olan güçlü immünomodülatörler olduğunu göstermektedir. Doğuştan gelen bağışıklık sisteminin istilacı bir patojeni hızla tanıma ve yanıt verme yeteneği, enfeksiyonu kontrol etmek için gereklidir. β-1,3 ve β-1,6 glukanları bağlayan bir tip II transmembran protein reseptörü olan Dectin-1, doğuştan gelen bağışıklık tepkisini başlatabilir ve düzenleyebilir [ 31 - 33 ]. İnsan hücrelerinde β-glukanların bulunmaması avantajıyla bakteri veya mantar hücre duvarında bulunan β-glukanları tanır. Daha sonra, fagositoz ve proinflamatuar faktörlerin üretimi dahil olmak üzere etkili bağışıklık tepkilerini tetikleyerek enfeksiyöz ajanların ortadan kaldırılmasına yol açar [ 34 , 35 ]]. Dectin-1, doğuştan gelen bağışıklık tepkisinden sorumlu hücrelerde eksprese edilir ve makrofajlar, nötrofiller ve dendritik hücrelerde bulunur [ 36 ]. Dectin-1 sitoplazmik kuyruğu, Toll benzeri reseptörler 2 ve 6 (TLR-2/6) ile işbirliği içinde tirozin kinaz yoluyla sinyal gönderen bir immünoreseptör tirozin bazlı aktivasyon motifi (ITAM) içerir [ 34 , 37 , 38 ]. Dectin-1 aktivasyonunun aşağısındaki tüm sinyal yolunun tamamı henüz tam olarak haritalanmadı, ancak birkaç sinyal molekülünün dahil olduğu bildirildi. Bunlar, NF-κB (Syk aracılı yol aracılığıyla), sinyal adaptör proteini CARD9 ve aktive edilmiş T hücrelerinin nükleer faktörüdür (NFAT) [ 39 - 41 ] (Şek.​(Şekil 3).3). Bu, sonunda interlökin (IL)-12, IL-6, tümör nekroz faktörü (TNF)-a ve IL-10 dahil olmak üzere sitokinlerin salınmasına yol açacaktır. Bu sitokinlerin bazıları kanser tedavisinde önemli rol oynayabilir. Öte yandan, dendritik hücreye özgü ICAM-3'ü yakalayan integrin olmayan homolog, SIGN ile ilgili 1 (SIGNR1), β-glukanların opsonik olmayan tanınmasında Dectin-1 ile işbirliği yapan makrofajlar üzerindeki bir başka önemli mannoz reseptörüdür. fagositoz için [ 42 ] (Şek .​(Şekil 3).3). Ayrıca, TLR-4'ün bloke edilmesinin, saflaştırılmış Ganoderma glukanlar (PS-G) tarafından indüklenen IL-12 p40 ve IL-10 üretimini engelleyebildiği, bu da TLR-4 sinyalleşmesinin glukanın indüklediği dendritik hücre olgunlaşmasında hayati bir rol oynadığını düşündürdüğü bulundu. . Bu etki aynı zamanda IκB kinazın, NF-KB aktivitesinin ve MAPK fosforilasyonunun güçlendirilmesi yoluyla da yürütülür [ 43 ]. Unutulmaması gereken ek bir nokta, bu çalışmaların β-glukanlar ve TLR arasındaki etkileşimi, kullanılan tüm saflaştırılmamış β-glukanları ima etmesidir, bu nedenle saf β-glukanlar ve TLR'nin fiili katılımı kanıtlanmayı beklemektedir.

            Figür 3
            β-glukanlar tarafından indüklenen bağışıklık aktivasyonu .
            β-glukanlar, bağışıklık hücrelerinde bulunan çeşitli zar reseptörleri üzerinde etkili olabilir. Tek başına veya diğer ligandlarla birlikte hareket edebilir. Çeşitli sinyal yolu aktive edilir ve bunların ilgili basitleştirilmiş aşağı akış sinyal molekülleri gösterilir. Reaktör hücreleri monositleri, makrofajları, dendritik hücreleri, doğal öldürücü hücreleri ve nötrofilleri içerir. Karşılık gelen yüzey reseptörleri listelenmiştir. β-glukanlar tarafından indüklenen immünomodülatör fonksiyonlar, hem doğal hem de adaptif immün yanıtı içerir. β-glukanlar ayrıca opsonik ve opsonik olmayan fagositozu arttırır ve tümör nekroz faktörü (TNF)-α ve çeşitli interlökinler (IL'ler) gibi bir dizi sitokin salınımını tetikler.

            β-glukanlar tarafından indüklenen diğer olası reseptörler ve sinyal yolları şu anda daha az kesindir. Örneğin, mantar kaynaklı β-glukanların bir formu olan lentinan'ın, miyeloid hücrelerin yüzeyinde bulunan çöpçü reseptöre bağlandığı ve fosfatidilinositol-3 kinazı (PI3K), Akt kinazı ve p38 mitojenle aktive olan protein kinazı (MAPK) tetiklediği bulunmuştur. ) sinyal yolu [ 44 ](Şek.​](Şekil 3).3). Ancak şimdiye kadar spesifik bir β-glukan çöpçü reseptörü tanımlanmamıştır. Candida albicans , β-glukanlardan türetilmiştir, ancak patojenik fungal β-glukanların diğer formları değil, LacCer reseptörüne bağlanabilir ve nötrofil göçünü kontrol etmede PI-3K yolunu aktive edebilir [ 45 ] (Şek.​(Şekil 3),3), ancak bu tür aktivasyon yolu, Candida'dan türetilen β-glukanlarda bulunan diğer molekülleri içerebilir.

            β-glukanların insan periferik kan mononükleer hücrelerinin proliferasyonunu indükleyebildiğini bulduk [ 46 ]. Ayrıca önemli IL-12 ve IL-10 üretimi ile monosit kaynaklı dendritik hücrelerin fenotipik ve fonksiyonel olgunlaşmasını artırabilir. Benzer bulgular Lin ve ark. PS-G kullanılarak, ek olarak, dendritik hücrelerin PS-G ile tedavisi, T hücresi uyarıcı kapasitesinde artış ve interferon-y ve IL-10'un T hücresi salgısında artış ile sonuçlandı [ 43 , 47 ]. Bu eyleme en azından kısmen Dectin-1 reseptörü aracılık eder. Bu tür immünomodülatör etkilerin gücü, farklı boyut ve dallanma karmaşıklığına sahip β-glukanlar ve saflaştırılmış polisakaritler arasında farklılık gösterir. Genel olarak, daha büyük boyutlu ve daha karmaşık β-glukanlar, örneğinGanoderma lucidum daha yüksek bağışıklık düzenleyici etkiye sahiptir.

            Adaptif bağışıklık sistemi, antijen sunan hücrelerin ve T hücrelerinin birleşik eylemi yoluyla çalışır. Spesifik olarak, CD8(+) sitotoksik T hücrelerine sınıf I majör histo-uyumluluk kompleksi (MHC-I) antijen sunumu, hücre içi patojenlerden proteozom tarafından üretilen peptitlerle sınırlıdır. Öte yandan, sınıf II MHC (MHC-II) endositik yol, hücre dışı patojenlerden CD4(+) T yardımcı hücrelere yalnızca proteolitik peptitler sunar. Karbonhidratların daha önce T hücrelerinden bağımsız olarak bağışıklık tepkilerini uyardığı düşünülmüştür [ 48 ]. Bununla birlikte, β-glukanlar gibi zwitteriyonik polisakaritler (hem pozitif hem de negatif yükler taşıyan polisakaritler), MHC-II endositik yolu yoluyla CD4(+) T hücrelerini aktive edebilir [ 49 ].]. β-glukanlar, nitrik oksit aracılı bir mekanizma ile düşük moleküler ağırlıklı karbonhidratlara işlenir. Bu karbonhidratlar daha sonra T yardımcı hücrelere sunulmak üzere dendritik hücreler gibi antijen sunan hücreler içindeki MHC-II'ye bağlanacaktır. İlk veriler, daha sonra Th-1 yanıtına yol açtığını ileri sürdü, ancak bu yönüyle ilgili çelişkili veriler var. İn vitro verilerimizde, β-glukanlar, T hücrelerini Th-1, Th-2 veya düzenleyici T hücrelerine polarize etme eğiliminde değildir [ 46 ]. Ancak son yayınlar, zimosan gibi β-glukanların, bir NOD fare modelinde T hücrelerini T-reg hücrelerine indükleyebileceğini öne sürdü [ 50 ]. Bu nedenle, β-glukanların T hücresi aktivasyonu yoluyla önemli immünolojik tepkileri indükleyip indükleyemeyeceği daha fazla araştırılmaya devam etmektedir.

            β-glukan etkisinin başka bir mekanizması, doğal öldürücü (NK) hücreler, nötrofiller ve lenfositlerde bulunan aktive edilmiş kompleman reseptörü 3 (CR3, ayrıca CD11b/CD18 olarak da bilinir) aracılığıyla gerçekleşir. Bu yol, fagositoza ve reaktör hücrelerinin parçalanmasına yol açan β-glukanların opsonik olarak tanınmasından sorumludur. β-glukanlar, CR3'ün lektin alanına bağlanır ve onu, reaktör hücrelerinin yüzeyindeki inaktive edilmiş tamamlayıcı 3b'ye (iC3b) bağlanmak için hazırlar. Reaktör hücreleri, monoklonal antikor ile etiketlenmiş ve iC3b ile kaplanmış kanser hücreleri dahil olmak üzere herhangi bir hücre tipinde olabilir. Nötrofiller içeren CR3 gibi β-glukanlarla aktive olan dolaşımdaki hücreler daha sonra iC3b kaplı tümör hücrelerinde hücre lizizini tetikleyecektir [ 28 ].]. Benzer şekilde, insan NK hücrelerinin çoğunluğu CR3 eksprese eder ve iC3b ile kaplanmış NK hücrelerinin opsonizasyonunun hedefin lizizinde bir artışa yol açtığı gösterilmiştir. β-glukan bağlanmasından alfa zincirinden (CD11b) ziyade CR3 molekülünün (CD18) beta zinciri sorumludur [ 51 , 52 ].

            Bu kavram, oral olarak verilen arpa β-1,3;1,4-glukanın bir antitümör monoklonal antikorun (anti-gangliosid-2 veya "3F8") aktivitesini güçlendirebildiğini gösteren in vivo çalışma ile desteklenmiştir, bu da gelişmiş tümör regresyonuna ve bir insan nöroblastom ksenogreft fare modelinde hayatta kalma [ 53 ]. 3F8 artı β-glukanın tama yakın tümör regresyonu veya hastalık stabilizasyonu ürettiği gösterilirken, 3F8 veya β-glukan tek başına önemli bir etki göstermedi. 3F8 artı β-glukan grubunun medyan hayatta kalması, kontrol gruplarınınkinden 5.5 kat daha yüksekti ve çalışma süresinin sonunda kontrollerin <%3'ünün aksine farelerin %47'sine kadarı ilerlemesiz kaldı. β-glukan, 3F8 veya 3F8 artı β-glukan ile tedavi edilen tüm farelerde hiçbir toksisite kaydedilmedi.

            Daha sonra çeşitli hedeflenen tümör antijenlerini ve tümör tiplerini araştırmak için benzer bir ksenograft modeli benimsenmiştir. β-glukanın, antijenlerden (GD2, GD3, CD20, epidermal büyüme faktörü reseptörü ve HER-2) veya insan tümör tiplerinden (nöroblastom, melanom, lenfoma, epidermoid karsinom ve meme) bağımsız olarak benzer anti-tümör etkileri gösterdiği bulunmuştur. karsinom) veya tümör bölgeleri (deri altı ve sistemik). Etki, β-1,3;1,4-glukanın moleküler boyutuyla ilişkiliydi [ 53 , 54 ].

            Ayrıca, çöpçü [ 55 ] ve laktosilseramid [ 56 , 57 ] olarak bilinen diğer 2 reseptör de β-glukanları bağlar ve bir dizi tepki ortaya çıkarabilir. β-glukanlar, TNF üretimini azaltarak, Escherichia coli sepsis'e maruz kalan sıçanlarda daha iyi sağ kalım sağlayarak çöpçü reseptörler yoluyla endotoksin klirensini artırabilir [ 58 ]. Öte yandan, laktosilseramid reseptörüne bağlanan β-glukanlar, miyeloid progenitör proliferasyonunu ve nötrofil oksidatif patlama yanıtını artırabilir, bu da lökosit anti-mikrobiyal aktivitede bir artışa yol açar. Ayrıca insan nötrofillerinde NF-κB'nin aktivasyonu ile de ilişkilidir [ 59 ].]. Yine diğer çalışmalarda, yapısal olarak farklı β-glukanların bu reseptörlere karşı farklı afiniteleri olduğu görülmektedir. Örneğin, yalnızca yüksek moleküler ağırlıklı β-glukanlar, laktosilseramid reseptörüne etkili bir şekilde bağlanabilir. Bu nedenle, farklı β-glukanlar tarafından indüklenen belirgin şekilde farklı konakçı tepkileri beklenir.

            Özetle, β-glukanlar, özellikle Dectin-1 ve CR3'te bağışıklıkla ilgili çeşitli reseptörler üzerinde etki eder ve geniş bir bağışıklık tepkileri yelpazesini tetikleyebilir. β-glukanların hedeflenen bağışıklık hücreleri arasında makrofajlar, nötrofiller, monositler, NK hücreleri ve dendritik hücreler bulunur (Şekil​(Figür 3).3). β-glukanlar tarafından indüklenen immünomodülatör fonksiyonlar, hem doğal hem de adaptif immün yanıtı içerir. β-glukanlar ayrıca opsonik ve opsonik olmayan fagositozu arttırır. β-glukanların T hücrelerinin alt kümesini belirli bir yöne doğru polarize edip etmediği henüz keşfedilmeyi bekliyor.

            β-glukanların kanser önleyici etkileri
            β-glukanların kendilerinin doğrudan sitotoksik etkilerinin olmadığı açık hale gelmektedir. β-glukanların sitotoksik etkilerini ima eden çalışmalar, ya β-glukan içeren bitkilerin ham ekstraktlarını kullanan çalışmalardan ya da β-glukan ile hazırlanmış monositlerin kullanımından yapılmıştır. Ganoderma lucidum (Lingzhi) gibi β-glukan içeren bitkiler için miselyumundan ganoderik asit [ 60 ] ve sporundan triterpenler [ 61 - 63 ] gibi başka aktif bileşenler de vardır.], bunların hepsinin bağımsız olarak doğrudan anti-kanser etkileri olduğu gösterilmiştir. Karsinom, sarkom ve blastoma dahil olmak üzere test edilen yaygın kanser hücre dizileri paneli üzerinde β-glukanların herhangi bir doğrudan sitotoksik etkisi bulamadık. β-glukanlar ayrıca herhangi bir apoptotik yolu tetiklemedi ve kanser hücrelerinin telomeraz ve telomerik uzunluğu üzerinde doğrudan bir etkiye sahip değildi (yayınlanmamış veriler). Aksine, in vitro olarak monositik soy lösemik hücrelerin proliferasyonunu uyardı ve lösemik hücrelerden türetilen dendritik hücrelerin olgunlaşmasını kolaylaştırabilir [ 64 ]. Bu nedenle, lösemi hastalarına β-glukan uygulanmasının faydalı olup olmadığı tartışmalıdır ve dikkatle değerlendirilmelidir.

            İngilizce literatürde, kanser hastalarında saflaştırılmış β-glukanların anti-kanser etkilerini doğrudan değerlendiren hiçbir klinik çalışma bulunmamaktadır. Çoğu çalışma, kanser durumundaki değişikliği ele almadan kanser hastalarının toksisite profilini veya altta yatan bağışıklık değişikliklerini değerlendiriyordu. Ek olarak, ilgili çalışmaların çoğunda saflaştırılmış β-glukanlar yerine ham bitki özleri veya özlerin bir kısmı kullanılmıştır. Bu nedenle, gerçek etkilerin β-glukanlar veya karışımda bulunan diğer karıştırıcı kimyasallarla ilgili olup olmadığını belirlemek zordur.

            İlerlemiş meme kanserli hastalarda oral β-glukanın kısa süreli immün etkilerinin prospektif bir klinik çalışmasında, ilerlemiş meme kanserli 23 kadın hasta, 16 sağlıklı kadın kontrol ile karşılaştırıldı [ 65 ]. Oral β-1,3;1,6-glukan günlük olarak alındı. Kan örnekleri 0 ve 15. günlerde toplanmıştır. Nispeten düşük bir başlangıç ​​beyaz hücre sayısına rağmen, oral β-glukanın ilerlemiş meme kanserli hastalarda periferik kan monositlerinin proliferasyonunu ve aktivasyonunu uyarabildiği bulunmuştur. Bunun klinik faydaya dönüştürülüp çevrilemeyeceği henüz cevapsız.

            β-glukanlı doğal ürünlerin kansere karşı etkileri üzerine klinik deneyler
            Özellikle mantar türlerinde bulunan birçok yenilebilir mantar, potansiyel antikanser aktivitesine sahip immünojenik maddeler verir [ 66 ]. β-glukanlar yaygın aktif bileşenlerden biridir (Tablo​(Tablo 1).1). İnsan kanserleri üzerinde yapılan sınırlı klinik deneylerde, çoğu iyi tolere edildi. Bunlar arasında, Lentinus edodes'ten türetilen lentinan , bir β-glukan formudur [ 67 ]. Zayıf enterik absorpsiyona sahip olduğundan, kemoterapiye adjuvan olarak kullanıldığında bazı klinik faydalar gösteren klinik çalışmalarda intraplevral, intraperitoneal [ 68 ] veya intravenöz yollar benimsenmiştir [ 69 ]. Schizophyllan (SPG) veya sizofiran, Schizophyllan commune'den türetilen başka bir β-glukandır . Üçlü sarmal kompleks β-glukan yapısı, yeterli oral emilimini engeller, bu nedenle intratümöral bir yol veya bölgesel lenf düğümlerine enjeksiyon benimsenmiştir [ 70 , 71 ]]. Randomize bir çalışmada, geleneksel kemoterapi ile kombine edilen SPG, yumurtalık kanserli hastaların uzun süreli sağkalım oranlarını iyileştirdi [ 72 ]. Ancak uzun süreli hayatta kalmanın daha sonra daha iyi bir tedavi oranına yol açıp açmayacağı cevapsız kaldı. tablo 1


            Aktif Bileşenler olarak β-glukanlar ile Seçilmiş Tıbbi Mantar
            Otlar Yaygın isim β-glukan yapısı β-glukan türleri
            Lentinus edodları Şitaki mantarı β-1,3;1,6-glukan Lentinaca

            şizofil komün Brezilya mantarı, Schizophyllan β-1,3;1,6-glukan Şizofilan (SPG) veya sizofiran

            grifola frondosa Maitake mantarı ksiloz ve mannoz ile β-1,3;1,6-glukan Maitake D-Kesiri

            Coriolus versicolor Yun Zhi Proteine ​​bağlı β-1,3;1,6-glukan PSP (polisakkarit peptid) PSK (polisakkarit-Kureha veya polisakkarit-K, krestin)

            Ganoderma lucidum Lingzhi, Reishi β-1,3;1,6-glukan Ganoderma polisakkaritleri, Ganopoly

            Agaricus blazei Brezilya güneş mantarı, Himematsutake mantarı Proteine ​​bağlı β-1,6-glukan Agaricus polisakkaritleri

            pleurotus ostreatus İstiridye mantarı, píng gû galaktoz ve mannoz ile β-1,3-glukan pleuran

            Coprinus komatus Tüylü mürekkep kapağı, avukat peruğu veya tüylü yele β-1,3-glukan koprinus polisakkaritleri
            Ayrı bir pencerede aç
            Grifola frondosa'dan (Maitake mantarı) ekstrakte edilen Maitake D-Fraction'ın , tek başına kemoterapi ile karşılaştırıldığında 2 kollu bir kontrol çalışmasında kemoterapi ile kombine edildiğinde hastaların >%60'ında akciğer, karaciğer ve meme tümörlerinin boyutunu küçülttüğü bulundu [ 73 ]. Etkiler lösemi, mide ve beyin kanseri hastalarında daha az belirgindi [ 74 ]. Ancak klinik çalışmanın geçerliliği daha sonra başka bir bağımsız gözlemci tarafından sorgulandı [ 75 ]. Coriolus versicolor'dan iki proteoglikan(Yun Zhi) – PSK (Polysaccharide-K) ve PSP (Polysaccharopeptide) – klinik deneme bilgileriyle birlikte en kapsamlı şekilde çalışılan β-glukan içeren bitkiler arasındadır. Bununla birlikte hem PSK hem de PSP proteine ​​bağlı polisakkaritlerdir, bu nedenle eylemleri saf β-glukanlara doğrudan eşdeğer gerekli değildir [ 76 ]. Japonya ve Çin'den yapılan bir dizi denemede, PSK ve PSP, önemli yan etkiler olmaksızın iyi tolere edildi [ 66 , 77-81 ] . Ayrıca karsinomlu ve lenfoid olmayan lösemili bazı hastaların sağkalımını da uzattılar.

            Ganoderma polisakaritler, Ganoderma lucidum'dan (Lingzhi, Reishi) türetilen β-glukanlardır . β-glukan, Ganoderma miselyumunun ana bileşeni iken, Ganoderma sporunun yalnızca küçük bir bileşenidir [ 7 ]. Ganoderma spor ekstraktındaki ana aktif bileşen, doğada sitotoksik olan triterpenoiddir. İlerlemiş akciğer kanserli hastalar üzerinde yapılan açık etiketli bir çalışmada, otuz altı hasta 12 hafta boyunca günde 5,4 g Ganoderma polisakkaritleri ile tedavi edildi ve sitokin profilleri üzerinde kesin olmayan değişkenler ve sonuçlar [ 82 ]. Aynı dozaj ve süreyi kullanan ileri kolorektal kanserli 47 hasta üzerinde yapılan başka bir çalışma, yine benzer değişken bağışıklık tepkisi paternleri göstermiştir [ 83 ].]. Bu sonuçlar, kısmen kullanılan ürünlerin safsızlığından kaynaklanabilecek, klinik olarak bağışıklık arttırıcı bitki özlerinin kullanılmasındaki klinik sonuçların tutarsızlığını vurgulamaktadır.

            Çözüm
            Farklı kaynaklardan türetilen β-glukanların içsel farklılıkları, değişken bağışıklık ve kanser karşıtı tepkiler ortaya çıkaracaktır. β-glukan araştırmasının mevcut sınırlamalarını literatürden özetledik (Tablo​(Tablo 2).2). β-glukan ile ilgili bitkiler üzerinde yapılan birçok çalışmada saflaştırılmış bileşiklerden ziyade ham ekstreler kullanıldığı için sınırlamalar daha da karmaşık hale gelmektedir, bu nedenle diğer kimyasalların kafa karıştırıcı etkileri tamamen göz ardı edilemez [ 84 ].]. β-glukanların bağışıklık sistemimiz üzerinde nasıl etki ettiğini ve anti-kanser etkilerinin nasıl uygulandığını anlamak ve karşılaştırmak istiyorsak, iyi bir test öncesi kalite kontrolüne sahip uygun β-glukan ürünlerinin dikkatli seçimi çok önemlidir. Kontrollü deneyler için bu alanda muhtemelen iyi tanımlanmış bir β-glukan standardına acilen ihtiyaç vardır. Şimdiye kadar, kanser hastaları için saflaştırılmış β-glukanların kullanımına ilişkin çok az klinik çalışma verisi bulunmaktadır. Gelecekteki çalışmalar, gelecekte kanser hastalarımıza β-glukanları rasyonel ve etkili bir şekilde uygulamamıza yardımcı olabilmesi için bu tür bilgileri elde etmeyi amaçlamalıdır. Tablo 2


            Mevcut β-glukanlar Araştırmasının Sınırlamalarına İlişkin Özet
            β-glukanlar Araştırmasında Mevcut Tuzaklar veya Sınırlamalar
            • Spesifik moleküler ağırlığa ve dallara sahip β-glukan kontrol standardı mevcut değildir. β-glukan yayınlarının çoğu, kitosan, β-glukanlar ve hücre duvarı partiküllerinin bir karışımı olan zimosan kullanmıştır.

            • β-glukan içeren bitkisel araştırmaların çoğu, saflaştırılmış β-glukanlardan ziyade özütlere dayanmaktadır.

            • Farklı kaynaklardan elde edilen β-glukanları değerlendirmek ve karşılaştırmak için şu anda niteliksel veya niceliksel olarak iyi karakterizasyon yöntemleri mevcut değildir.

            • β-glukanın reseptör ve sinyal yollarına ilişkin bilgileri hayvan çalışmalarına veya klinik deneylere uygulamak için translasyonel yaklaşım eksikliği.

            • β-glukan tarafından indüklenen kesin immünolojik eylemler ve sinyal yolu hala belirsizdir ve daha fazla tanımlanmalıdır.
            Ayrı bir pencerede aç
            Git: rekabet eden çıkarlar


            Yazarlar, herhangi bir ilaç veya ticari şirketin dahil olduğu mali nitelikteki çatışmalar da dahil olmak üzere herhangi bir çıkar çatışması olmadığını beyan eder.

            Git: Yazar katkıları

            GCFC konsepti başlattı, makaleyi yazdı ve revize etti ve illüstrasyonları yarattı. WKC, taslağın yazımı, koordinasyonu ve gözden geçirilmesiyle ilgilendi. DMS, makalenin hazırlanmasında ve revizyonunda yer alır.

            Git: Teşekkür

            İngilizce düzenleme için Dr. Anita Chan'a (U. Alberta), grafik figürlerin üretimi için Bay Spencer Ng'ye, Edward Sai-Kim Hotung Pediatrik Eğitim ve Araştırma Fonu'na, URC/CRCG Grants ve Pau Kwong'a teşekkür ederiz. Wun Charitable Foundation, beta-glukanla ilgili çalışmaları desteklediği için.

            Git: Referanslar
            • Kim MJ, Lee SD, Kim DR, Kong YH, Sohn WS, Ki SS, Kim J, Kim YC, Han CJ, Lee JO, et al. Kore kanser hastaları arasında tamamlayıcı ve alternatif tıp kullanımı. Kore iç hastalıkları dergisi. 2004; 19 :250–256. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            • McEachrane-Gross FP, Liebschutz JM, Berlowitz D. Kanserli veya kronik ağrılı gazilerde seçilmiş tamamlayıcı ve alternatif tıp (CAM) tedavilerinin kullanımı: kesitsel bir araştırma. BMC tamamlayıcı ve alternatif tıp. 2006; 6:34 . doi: 10.1186/1472-6882-6-34. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Inglin S, Amsler S, Arigoni F, Burton-Jeangros C, Pargoux-Vallade C, Sappino AP. [Onkoloji hastalarında tamamlayıcı ilaç kullanımı] Revue Medicale suisse. 2008; 4 :1264–1266. [ PubMed ] [ Google Akademik ]
            • Armstrong TS, Gilbert MR. Primer beyin tümörlü hastalarda tamamlayıcı ve alternatif tıbbi tedavi kullanımı. Güncel nöroloji ve nörobilim raporları. 2008; 8 :264–268. doi: 10.1007/s11910-008-0040-z. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Mueller CM, Mai PL, Bucher J, Peters JA, Loud JT, Greene MH. Genetik meme ve yumurtalık kanseri riski yüksek kadınlarda tamamlayıcı ve alternatif tıp kullanımı. BMC tamamlayıcı ve alternatif tıp. 2008; 8:17 . doi: 10.1186/1472-6882-8-17. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Yang C, Chien LY, Tai CJ. Tayvan'da ayaktan kemoterapi alan kanserli hastalarda tamamlayıcı ve alternatif tıp kullanımı. J Altern Kompleman Med. 2008; 14 :413–416. doi: 10.1089/acm.2007.7181. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chan WK, Lam DT, Hukuk HK, Wong WT, Koo MW, Lau AS, Lau YL, Chan GC. Ganoderma lucidum miselyum ve spor özleri, immünoterapi için doğal adjuvanlar olarak. J Altern Kompleman Med. 2005; 11 :1047-1057. doi: 10.1089/acm.2005.11.1047. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chang R. Antikanser adjuvanları olarak geleneksel Çin tıbbı bitkilerinden elde edilen biyoaktif polisakkaritler. J Altern Kompleman Med. 2002; 8 :559–565. doi: 10.1089/107555302320825066. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chang S, Miles P. Mantarlar: yetiştirme, besin değeri, tıbbi etki ve çevresel etki. 1. CRC Basın; 2004. Ganoderma lucidum – tıbbi mantarların lideri; s. 357-373. [ Google Akademik ]
            • Chan G, Mullen P, Ha S, Wong G, Lee T, YL L. Hong Kong'daki pediatrik onkoloji hastalarında alternatif tıbbi tedavilerin kullanımı. Hong Kong Pediatrik Derneği'nin Yıllık Bilimsel Toplantısı. 1998.
            • Wasser SP. Antitümör ve immünomodülatör polisakkaritlerin kaynağı olarak tıbbi mantarlar. Appl Microbiol Biotechnol. 2002; 60 :258-274. doi: 10.1007/s00253-002-1076-7. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Borçlular AT, Keen CL, Gershwin ME. Mantarlar, tümörler ve bağışıklık: bir güncelleme. Exp Biol Med (Maywood) 2004; 229 :393–406. [ PubMed ] [ Google Akademik ]
            • Ooi VE, Liu F. Polisakkarit-protein komplekslerinin immünomodülasyonu ve anti-kanser aktivitesi. Curr Med Chem. 2000; 7 :715–729. [ PubMed ] [ Google Akademik ]
            • Stone BA, Clarke AE. (1,3)-D-glukanların kimyası ve biyolojisi. Victoria, Avustralya.: La Trobe University Press; 1992. [ Google Akademik ]
            • Bohn J, BeMiller J. (1->3)-β-Glukanlar olarak biyolojik tepki değiştiriciler: yapı-fonksiyonel aktivite ilişkilerinin gözden geçirilmesi. Karbonhidrat Polimerleri. 1995; 28 :3–14. doi: 10.1016/0144-8617(95)00076-3. [ CrossRef ] [ Google Akademik ]
            • Hanada N, Katayama T, Kunimori A, Yamashita Y, Takehara T. Streptococcus sobrinus'tan glukosiltransferazlarla sentezlenen dört farklı glukanlar. Mikrobiyota. 1993; 73 :23–35. [ PubMed ] [ Google Akademik ]
            • Rolin DB, Pfeffer PE, Osman SF, Szwergold BS, Kappler F, Benesi AJ. Bradyrhizobium japonicum USDA 110'dan bir fosfokolin ikameli beta-(1,3);(1,6) makrosiklik glukanın yapısal çalışmaları. Biochimica et biophysica acta. 1992; 1116 :215-225. [ PubMed ] [ Google Akademik ]
            • Jelsma J, Kreger DR. Mantar hücre duvarlarından (1 yol 3'e yol açar) -beta-D-glukan üzerinde ultrastrüktürel gözlemler. Karbonhidrat araştırması. 1975; 43 :200–203. doi: 10.1016/S0008-6215(00)83988-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Marszalek PE, Li H, Fernandez JM. Tek moleküllü atomik kuvvet mikroskobu ile parmak izi polisakkaritler. Doğa biyoteknolojisi. 2001; 19 :258-262. doi: 10.1038/85712. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Dixon DR, Darveau RP. Lipopolisakkarit heterojenliği: lipit a yapısının bakteriyel modifikasyonuna doğuştan gelen konak tepkileri. J Dent Arş. 2005; 84 :584–595. doi: 10.1177/154405910508400702. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Gaffin SL. Limulus amebosit lizatı ile demir dekstranın viskoz opak çözeltilerinde endotoksin tayini. Klinik ve biyolojik araştırmalarda ilerleme. 1979; 29 :221–227. [ PubMed ] [ Google Akademik ]
            • Knudsen KE, Jensen BB, Hansen I. Beta-D-glukan açısından zengin yulaf fraksiyonlarından oluşan diyetlerle beslenen domuzların ince ve kalın bağırsaklarında polisakkaritlerin ve diğer ana bileşenlerin sindirimi. Br J Nutr. 1993; 70 :537-556. doi: 10.1079/BJN19930147. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Ohno N, Terui T, Chiba N, Kurachi K, Adachi Y, Yadomae T. Yüksek dallı (1-->3)-beta-D-glukanların formolize karşı direnci. Kimya Eczacı Boğası (Tokyo) 1995; 43 :1057-1060. [ PubMed ] [ Google Akademik ]
            • Wang H, Weening D, Jonkers E, Boer T, Stellaard F, Küçük AC, Preston T, Vonk RJ, Priebe MG. Sindirilemeyen karbonhidratların fermantasyon derecesini tahmin etmek için eğri uydurma bir yaklaşım. Eur J Clin Invest. 2008; 38 :863-868. [ PubMed ] [ Google Akademik ]
            • Vos A, M'Rabet L, Stahl B, Boehm G, Garssen J. Ağızdan uygulanan sindirilemeyen karbonhidratların bağışıklık düzenleyici etkileri ve potansiyel çalışma mekanizmaları. Kritik Rev İmmünol. 2007; 27 :97-140. [ PubMed ] [ Google Akademik ]
            • Vetvicka V, Dvorak B, Vetvickova J, Richter J, Krizan J, Sima P, Yvin JC. Oral olarak uygulanan deniz (1-->3)-beta-D-glukan Phycarine hem hümoral hem de hücresel bağışıklığı uyarır. Int J Biol Macromol. 2007; 40 :291–298. doi: 10.1016/j.ijbiomac.2006.008.009. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Rice PJ, Lockhart BE, Barker LA, Adams EL, Ensley HE, Williams DL. Sıçanlarda intravenöz uygulamayı takiben fungal (1-3)-beta-D-glukanların farmakokinetiği. Int İmmünofarmakol. 2004; 4 :1209–1215. doi: 10.1016/j.intimp.2004.05.013. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Hong F, Yan J, Baran JT, Allendorf DJ, Hansen RD, Ostroff GR, Xing PX, Cheung NK, Ross GD. Oral olarak uygulanan beta-1,3-glukanların, murin tümör modellerinde antitümör monoklonal antikorların tümör öldürücü aktivitesini arttırdığı mekanizma. J İmmünol. 2004; 173 :797-806. [ PubMed ] [ Google Akademik ]
            • Rice PJ, Adams EL, Ozment-Skelton T, Gonzalez AJ, Goldman MP, Lockhart BE, Barker LA, Breuel KF, Deponti WK, Kalbfleisch JH, et al. Çözünebilir glukanların oral yoldan verilmesi ve gastrointestinal absorpsiyonu, enfeksiyon tehdidine karşı artan direnci uyarır. Farmakoloji ve deneysel terapötikler Dergisi. 2005; 314 :1079-1086. doi: 10.1124/jpet.105.085415. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Lehne G, Haneberg B, Gaustad P, Johansen PW, Preus H, Abrahamsen TG. Yeni bir çözünür dallı beta-1,3-D-glukanın oral yoldan verilmesi iyi tolere edilir ve sağlıklı gönüllülerde tükürükte immünoglobulin A konsantrasyonlarının artmasına neden olabilir. Clin Exp İmmünol. 2006; 143 :65-69. doi: 10.1111/j.1365-2249.2005.02962.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Sun L, Zhao Y. Dectin-1'in bağışıklık tepkisindeki biyolojik rolü. Uluslararası immünoloji incelemeleri. 2007; 26 :349–364. doi: 10.1080/08830180701690793. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Brown GD, Herre J, Williams DL, Willment JA, Marshall AS, Gordon S. Dectin-1, beta-glukanların biyolojik etkilerine aracılık eder. Deneysel tıp Dergisi. 2003; 197 :1119-1124. doi: 10.1084/jem.20021890. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Herre J, Gordon S, Brown GD. Dectin-1 ve makrofajlar tarafından beta-glukanların tanınmasındaki rolü. Moleküler immünoloji. 2004; 40 :869-876. doi: 10.1016/j.molimm.2003.10.007. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Schorey JS, Lawrence C. Desen tanıma reseptörü Dectin-1: mantarlardan mikobakterilere. Curr İlaç Hedefleri. 2008; 9 :123–129. doi: 10.2174/138945008783502430. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Kahverengi GD. Dectin-1: bir sinyal veren TLR olmayan model tanıma reseptörü. Nat Rev İmmünol. 2006; 6 :33–43. doi: 10.1038/nri1745. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Taylor PR, Brown GD, Reid DM, Willment JA, Martinez-Pomares L, Gordon S, Wong SY. Beta-glukan reseptörü, dektin-1, ağırlıklı olarak monosit/makrofaj ve nötrofil soylarının hücrelerinin yüzeyinde eksprese edilir. J İmmünol. 2002; 169 :3876–3882. [ PubMed ] [ Google Akademik ]
            • Gantner BN, Simmons RM, Canavera SJ, Akira S, Underhill DM. Dectin-1 ve Toll-benzeri reseptör tarafından ortaklaşa inflamatuar yanıtların indüksiyonu 2. Deneysel tıp dergisi. 2003; 197 :1107–1117. doi: 10.1084/jem.20021787. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Herre J, Marshall AS, Caron E, Edwards AD, Williams DL, Schweighoffer E, Tybulewicz V, Reis e Sousa C, Gordon S, Brown GD. Dectin-1, makrofajlarda maya fagositozu için yeni mekanizmalar kullanır. Kan. 2004; 104 :4038–4045. doi: 10.1182/kan-2004-03-1140. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Goodridge HS, Simmons RM, Underhill DM. Candida albicans mayası veya zimosan tarafından Dectin-1 uyarımı, makrofajlarda ve dendritik hücrelerde NFAT aktivasyonunu tetikler. J İmmünol. 2007; 178 :3107–3115. [ PubMed ] [ Google Akademik ]
            • Gross O, Gewies A, Finger K, Schafer M, Sparwasser T, Peschel C, Forster I, Ruland J. Card9, doğuştan gelen mantar önleyici bağışıklık için TLR olmayan bir sinyal yolunu kontrol eder. Doğa. 2006; 442 :651–656. doi: 10.1038/nature04926. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Rogers NC, Slack EC, Edwards AD, Nolte MA, Schulz O, Schweighoffer E, Williams DL, Gordon S, Tybulewicz VL, Brown GD, et al. Dectin-1 tarafından Syk'ye bağlı sitokin indüksiyonu, C tipi lektinler için yeni bir model tanıma yolu ortaya koymaktadır. bağışıklık. 2005; 22 :507–517. doi: 10.1016/j.immuni.2005.03.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Taylor PR, Brown GD, Herre J, Williams DL, Willment JA, Gordon S. Spesifik makrofajlar tarafından mayanın nonopsonik tanınmasında SIGNR1 ve beta-glukan reseptörünün (dektin-1) rolü. J İmmünol. 2004; 172 :1157–1162. [ PubMed ] [ Google Akademik ]
            • Lin YL, Liang YC, Lee SS, Chiang BL. Ganoderma lucidum'dan saflaştırılan polisakarit, insan monosit türevli dendritik hücrelerin NF-kappaB ve p38 mitojenle aktive olan protein kinaz yolları tarafından aktivasyonunu ve olgunlaşmasını indükledi. J Leukoc Biol. 2005; 78 :533–543. doi: 10.1189/jlb.0804481. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Rice PJ, Kelley JL, Kogan G, Ensley HE, Kalbfleisch JH, Browder IW, Williams DL. İnsan monosit süpürücü reseptörleri (1-->3)-beta-D-glukanlar için model tanıma reseptörleridir. J Leukoc Biol. 2002; 72 :140–146. [ PubMed ] [ Google Akademik ]
            • Sato T, Iwabuchi K, Nagaoka I, Adachi Y, Ohno N, Tamura H, Seyama K, Fukuchi Y, Nakayama H, Yoshizaki F, et al. Candida albicans türevli beta-1,6-uzun glikozit yan zincir dallı beta-glukan tarafından insan nötrofil kemotaksisinin uyarılması. J Leukoc Biol. 2006; 80 :204–211. doi: 10.1189/jlb.0106069. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chan WK, Hukuk HK, Lin ZB, Lau YL, Chan GC. İnsan dendritik hücrelerinin mantar ve arpadan elde edilen farklı immünomodülatör polisakkaritlere tepkisi. Int İmmünol. 2007; 19 :891-899. doi: 10.1093/intimm/dxm061. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Lin YL, Lee SS, Hou SM, Chiang BL. Ganoderma lucidum'dan saflaştırılan polisakkarit, insan dendritik hücrelerinde gen ekspresyonu değişikliklerini indükler ve BALB/c farelerinde T yardımcı 1 bağışıklık tepkisini destekler. Mol İlaç. 2006; 70 :637-644. doi: 10.1124/mol.106.022327. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Bohn J, BeMiller J. (1->3)-β-Glukanlar olarak biyolojik tepki değiştiriciler: yapı-fonksiyonel aktivite ilişkilerinin gözden geçirilmesi. Karbonhidrat Polimerleri. 1995; 28 :3–14. doi: 10.1016/0144-8617(95)00076-3. [ CrossRef ] [ Google Akademik ]
            • Cobb BA, Wang Q, Tzianabos AO, Kasper DL. MHCII yolu ile polisakkarit işleme ve sunumu. Hücre. 2004; 117 :677–687. doi: 10.1016/j.cell.2004.05.001. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Karumuthil-Melethil S, Perez N, Li R, Vasu C. TLR2 ve dektin 1 yoluyla doğuştan gelen bağışıklık tepkisinin uyarılması tip 1 diyabeti önler. J İmmünol. 2008; 181 :8323–8334. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
            • Klein E, Di Renzo L, Yefenof E. CR3, CD11b/CD18'in insan NK hücreleri tarafından sitolize katkısı. Moleküler immünoloji. 1990; 27 :1343-1347. doi: 10.1016/0161-5890(90)90041-W. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Di Renzo L, Yefenof E, Klein E. İnsan NK hücrelerinin işlevi, CR3 (CD11b/CD18) Avrupa immünoloji dergisinin bir ligandı olan beta-glukan tarafından geliştirilmiştir. 1991; 21 :1755-1758. doi: 10.1002/eji.1830210726. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Cheung NK, Modak S, Vickers A, Knuckles B. Oral olarak uygulanan beta-glukanlar, monoklonal antikorların anti-tümör etkilerini arttırır. Kanser Immunol Immunother. 2002; 51 :557-564. [ PubMed ] [ Google Akademik ]
            • Modak S, Koehne G, Vickers A, O'Reilly RJ, Cheung NK. Lenfomanın rituksimab tedavisi, oral yoldan verilen (1-->3),(1-->4)-D-beta-glukan ile güçlendirilir. Leuk Res. 2005; 29 :679–683. doi: 10.1016/j.leukres.2004.10.008. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Dushkin MI, Safina AF, Vereschagin EI, Schwartz Y. Karboksimetillenmiş beta-1,3-glukan, makrofajlarda asetillenmiş düşük yoğunluklu lipoproteinlerin in vitro bağlanmasını ve bozulmasını inhibe eder ve in vivo olarak plazma klirensini modüle eder. Hücre Biyokimya İşlevi . 1996; 14 :209-217. [ PubMed ] [ Google Akademik ]
            • Zimmerman JW, Lindermuth J, Balık PA, Saray GP, Stevenson TT, DeMong DE. Beta-(1-3)-glukan immünomodülatörü, PGG-glukan ve insan lökositlerinin laktosilseramidi arasındaki yeni bir karbonhidrat-glikosfingolipid etkileşimi. Biyolojik kimya Dergisi. 1998; 273 :22014–22020. doi: 10.1074/jbc.273.34.22014. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Iwabuchi K, Nagaoka I. Laktosilseramid ile zenginleştirilmiş glikosfingolipid sinyal alanı, insan nötrofillerinden süperoksit oluşumuna aracılık eder. Kan. 2002; 100 :1454–1464. [ PubMed ] [ Google Akademik ]
            • Vereschagin EI, van Lambalgen AA, Dushkin MI, Schwartz YS, Polyakov L, Heemskerk A, Huisman E, Thijs LG, van den Bos GC. Çözünür glukan, sıçandaki endotoksin şokuna karşı koruma sağlar: çöpçü reseptörünün rolü. Şok (Augusta, Ga) 1998; 9 :193–198. [ PubMed ] [ Google Akademik ]
            • Wakshull E, Brunke-Reese D, Lindermuth J, Fisette L, Nathans RS, Crowley JJ, Tufts JC, Zimmerman J, Mackin W, Adams DS. Çözünür bir beta-(1,3)-glukan olan PGG-glukan, oksidatif patlama tepkisini, mikrobisidal aktiviteyi arttırır ve insan PMN'sinde NF-kappa B-benzeri bir faktörü aktive eder: bir glikosfingolipid beta-(1,3) için kanıt -glukan reseptörü. İmmünofarmakoloji. 1999; 41 :89-107. doi: 10.1016/S0162-3109(98)00059-9. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Tang W, Liu JW, Zhao WM, Wei DZ, Zhong JJ. Ganoderma lucidum mycelia'dan Ganoderic asit T, akciğer kanseri hücrelerinde mitokondri aracılı apoptozu indükler. Hayat Bilimi. 2006; 80 :205–211. doi: 10.1016/j.lfs.2006.09.001. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Lin SB, Li CH, Lee SS, Kan LS. Ganoderma lucidum'dan elde edilen triterpenle zenginleştirilmiş özler, protein kinaz C'yi baskılayarak, mitojenle aktive olan protein kinazları aktive ederek ve G2 fazlı hücre döngüsü durdurma yoluyla hepatoma hücrelerinin büyümesini engeller. Hayat Bilimi. 2003; 72 :2381–2390. doi: 10.1016/S0024-3205(03)00124-3. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Ganoderma lucidum sporlarından Min BS, Gao JJ, Nakamura N, Hattori M. Triterpenler ve bunların meth-A ve LLC tümör hücrelerine karşı sitotoksisiteleri. Kimya Eczacı Boğası (Tokyo) 2000; 48 :1026-1033. [ PubMed ] [ Google Akademik ]
            • Muller CI, Kumagai T, O'Kelly J, Seeram NP, Heber D, Koeffler HP. Ganoderma lucidum lösemi, lenfoma ve multipl miyelom hücrelerinde apoptoza neden olur. Lösemi araştırması. 2006; 30 :841-848. doi: 10.1016/j.leukres.2005.12.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chan WKD, Cheung CC, Hukuk HKD, Lau YLD, Chan GCD. Ganoderma lucidum polisakaritler, insan monositik lösemi hücrelerini, immün uyarıcı işlevi olan dendritik hücrelere indükleyebilir. J Hematol Oncol. 2008; 1 :9. doi: 10.1186/1756-8722-1-9. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Demir G, Klein HO, Mandel-Molinas N, Tüzüner N. Beta glukan, ilerlemiş meme kanserli hastaların periferik kanındaki monositlerin proliferasyonunu ve aktivasyonunu indükler. Int İmmünofarmakol. 2007; 7 :113–116. doi: 10.1016/j.intimp.2006.08.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Çocuk PM. Mantar glukanları ve proteoglikanların kanser tedavisinde kullanımı. Alternatif Med Rev 2000; 5 :4–27. [ PubMed ] [ Google Akademik ]
            • Miyakoshi H, Aoki T, Mizukoshi M. Lentinan'ın insanda oyunculuk mekanizmaları – II. Bir interferon indükleyicisi olarak spesifik olmayan hücre aracılı sitotoksisitenin geliştirilmesi. Uluslararası immünofarmakoloji dergisi. 1984; 6 :373–379. doi: 10.1016/0192-0561(84)90057-2. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Kawaoka T, Yoshino S, Hazama S, Tangoku A, Oka M. [Malign efüzyon için lentinan ve OK-432'nin intraplevral veya peritoneal uygulamasının klinik değerlendirmesi] Gan to kagaku ryoho. 2003; 30 :1562–1565. [ PubMed ] [ Google Akademik ]
            • Nakano H, Namatame K, Nemoto H, Motohashi H, Nishiyama K, Kumada K. Rezeke edilemeyen ve tekrarlayan hastalıkları olan ileri mide kanseri hastalarında lentinan'ın çok kurumlu prospektif çalışması: sağkalımın uzaması ve yaşam kalitesinin iyileştirilmesi üzerindeki etkisi. Kanagawa Lentinan Araştırma Grubu. Hepato-gastroenteroloji. 1999; 46 :2662–2668. [ PubMed ] [ Google Akademik ]
            • Nakano T, Oka K, Hanba K, Morita S. Sizofiranın intratumoral uygulaması, serviks kanserinde Langerhans hücresini ve T hücre infiltrasyonunu aktive eder. Klinik immünoloji ve immünopatoloji. 1996; 79 :79-86. doi: 10.1006/clin.1996.053. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Kano Y, Kakuta H, Hashimoto J. Baş ve boyun kanserli hastalarda sizofiranın bölgesel lenf düğümleri üzerindeki etkisi. Biyoterapi (Dordrecht, Hollanda) 1996; 9 :257-262. [ PubMed ] [ Google Akademik ]
            • Inoue M, Tanaka Y, Sugita N, Yamasaki M, Yamanaka T, Minagawa J, Nakamuro K, Tani T, Okudaira Y, Karita T, et al. Adjuvan sizofiran immünoterapisi ile yumurtalık kanserli hastalarda uzun vadeli prognozun iyileştirilmesi: prospektif randomize kontrollü bir çalışma. Biyoterapi (Dordrecht, Hollanda) 1993; 6 :13–18. [ PubMed ] [ Google Akademik ]
            • Kodama N, Komuta K, Nanba H. MD-fraksiyon yardım kanser hastalarına hizmet edebilir mi? Alternatif Med Rev. 2002; 7 :236–239. [ PubMed ] [ Google Akademik ]
            • Kodama N, Komuta K, Nanba H. Maitake (Grifola frondosa) D-Kesirinin kanser hastalarında NK hücrelerinin aktivasyonu üzerindeki etkisi. J Med Gıda. 2003; 6 :371–377. doi: 10.1089/109662003772519949. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Black W. Kodama ve arkadaşlarının Alternative Medicine Review dergisinin Haziran 2002 sayısında yer alan makaleyi okurken birkaç bariz hata ortaya çıktı. "MD-fraksiyon kanser hastalarına yardım edebilir mi" başlıklı? Alternatif Med Rev. 2002; 7 :451. [ PubMed ] [ Google Akademik ]
            • Fisher M, Yang LX. Polisakkarit-K'nin (PSK) antikanser etkileri ve mekanizmaları: kanser immünoterapisinin etkileri. Antikanser Araş. 2002; 22 :1737-1754. [ PubMed ] [ Google Akademik ]
            • Hayakawa K, Mitsuhashi N, Saito Y, Nakayama Y, Furuta M, Nakamoto S, Kawashima M, Niibe H. Küçük hücreli dışı akciğer kanseri hastalarında radikal radyoterapiyi takiben adjuvan tedavi olarak Krestin'in etkisi. Kanser Tespiti Önceki . 1997; 21 :71-77. [ PubMed ] [ Google Akademik ]
            • Sakamoto J, Nakazato H. [İleri mide kanserinde adjuvan immünokemoterapinin değerlendirilmesi] Gan to kagaku ryoho. 1993; 20 :2525–2530. [ PubMed ] [ Google Akademik ]
            • Ohno R, Yamada K, Masaoka T, Ohshima T, Amaki I, Hirota Y, Horikoshi N, Horiuchi A, Imai K, Kimura I, et al. Proteine ​​bağlı bir polisakarit preparatı kullanan yetişkinlerde akut lenfositik olmayan löseminin randomize bir kemoimmünoterapi denemesi. Kanser Immunol Immunother. 1984; 18 :149–154. doi: 10.1007/BF00205503. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Nishiwaki Y, Furuse K, Fukuoka M, Ota M, Niitani H, Asakawa M, Nakai H, Sakai S, Ogawa N. [Akciğer adenokarsinomu için PSK kombine immüno-kemoterapinin randomize kontrollü bir çalışması. Gelişmiş Akciğer Kanseri İmmüno-kemoterapi Çalışma Grubu] Gan'dan kagaku ryoho'ya. 1990; 17 :131-136. [ PubMed ] [ Google Akademik ]
            • Git P, Chung CH. Nazofarenks karsinoması olan hastalarda adjuvan PSK immünoterapisi. Uluslararası tıbbi araştırma dergisi. 1989; 17 :141–149. [ PubMed ] [ Google Akademik ]
            • Gao Y, Tang W, Dai X, Gao H, Chen G, Ye J, Chan E, Koh HL, Li X, Zhou S. Suda çözünür Ganoderma lucidum polisakkaritlerinin ileri akciğer kanserli hastaların bağışıklık fonksiyonları üzerindeki etkileri. J Med Gıda. 2005; 8 :159–168. doi: 10.1089/jmf.2005.8.159. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chen X, Hu ZP, Yang XX, Huang M, Gao Y, Tang W, Chan SY, Dai X, Ye J, Ho PC, et al. İlerlemiş kolorektal kanserli hastalarda bir bitkisel immünomodülatöre verilen immün yanıtların izlenmesi. Int İmmünofarmakol. 2006; 6 :499–508. doi: 10.1016/j.intimp.2005.08.026. [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Chen J, Seviour R. Mantar beta-(1->3), (1-->6)-glukanların tıbbi önemi. Mycol Res. 2007; 111 :635–652. doi: 10.1016/j.mycres.2007.02.011. [ PubMed ] [ CrossRef ] [ Google Akademik ]

            Yorum yap


            • #7
              Beta Glukan Nedir ? Beta Glukan Ne İşe Yarar ? Faydaları Nelerdir ?


              β-glukanlar ve kolesterol (İnceleme)

              Petr Sima , 1 Luca Vannucci , 1ve Vaclav Vetvicka 2
              Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
              Git: Soyut


              Hiperkolesterolemi, metabolik sendrom, hipertansiyon ve diyabet ile birlikte kardiyovasküler hastalığın birincil risk faktörlerinden biridir. İlerleme kaydedilmiş olmasına rağmen, dislipideminin önlenmesi ve tedavi edilmesi için yeni yöntemler arayışı devam etmektedir ve kardiyovasküler hastalık için mevcut tedaviler çeşitli yan etkilere neden olmaktadır. β-glukanlar, mantarlar gibi çeşitli doğal kaynaklarda bulunan doğrusal dallanmamış polisakkaritlerdir. Yapıları gereği doğuştan gelen bağışıklık reseptörleri ile etkileşime girebilirler, ancak aynı zamanda sindirim sisteminde diyet lifi olarak da işlev görürler. β-glukanların çözünmeyen ve çözünen olmak üzere iki formu olduğundan, bunlar bağırsakta lipitler ve safra tuzları ile etkileşime girebilir ve sonuç olarak kolesterol seviyelerini düşürür. Bu nedenle, dislipidemili hastaları tedavi etmek için uygun bir terapötik seçenek olarak geliştirilebilirler. çünkü önemli bir yan etkiye neden olmayan doğal moleküllerdir. Mevcut inceleme, β-glukanların kolesterol düzeyleri üzerindeki etkilerini destekleyen kanıtları tartışmaktadır.

              Anahtar Kelimeler: kolesterol, β-glukanlar, diyet, lif, hastalık, diyabet, obezite
              Git: giriiş


              Dünya Sağlık Örgütü tarafından yayınlanan istatistiklere göre, kardiyovasküler hastalık (KVH) dünya çapında önde gelen bir ölüm ve hastalık nedenidir ( 1 ). 1980 ile 2014 yılları arasında dünya çapında obezite prevalansı iki katına çıktı. Şu anda, ≥18 yaşındaki yetişkinlerin yaklaşık %40'ı (~2 milyar insan) fazla kilolu ve ~%13'ü (~600 milyon) obezdir ( 2 ). Ayrıca, 5 yaşından küçük 41 milyon çocuk fazla kilolu veya obezdir ( 3 ). Hastalık Kontrol ve Önleme Merkezi tarafından derlenen istatistiklere göre, yalnızca ABD'de her yıl yaklaşık 610.000 kişi kalp hastalığına yenik düşüyor ve her 4 ölümden 1'ini temsil ediyor ( 4). Çeşitli çevresel ve davranışsal faktörler KVH riskini artırabilir, ancak yaygın kanıtlar, sedanter yaşam tarzları, düşük enerji tüketimi ile birlikte aşırı beslenme ve yetersiz beslenme bileşimini içeren çağdaş yaşam tarzlarının obezite oranlarındaki artışın arkasındaki başlıca nedenler olduğunu göstermektedir. ( 5 – 8 ). Obez bireylerde aşırı yağ dokusu ve dislipidemi görülür ve bu durumların tümü KVH için majör risk faktörleri olan metabolik sendrom, hipertansiyon, hiperkolesterolemi ve diyabet gibi birçok kronik hastalığa neden olabileceği öne sürülmüştür (5-8 ) .). Aşırı adipozite, tümör nekroz faktörü a, interlökin-6 (IL-6) ve IL-1 ( 9 , 10 ) dahil olmak üzere proinflamatuar sitokinleri serbest bırakan aktif makrofajların birikmesine eşlik eder. Bu patolojik durumlar, kan kolesterolünün endojen oluşumunu ve ardından kan damarı duvarlarında birikmesini artırır ( 11 , 12 ). Bu nedenle, yüksek düşük yoğunluklu lipoprotein kolesterol (LDL-C) seviyelerini düşürmenin yollarını belirlemek, halk sağlığı açısından önemli bir sorundur ve yeni diyet takviyelerinin tanıtılması, bunu başarmanın önemli bir yöntemi olabilir (13 ) .

              Kolesterol seviyelerini düzenlemeye yönelik yeni yöntemler geliştirmeyi amaçlayan bir dizi çalışma halen devam etmektedir. Nutrasötikler olarak bilinen glukomannanlar, bitki sterolleri, berberin veya kırmızı maya pirinci dahil olmak üzere doğal kaynaklı ürünlerin tek başına ( 14 ) veya 3-hidroksi- gibi yaygın olarak kullanılan statinlerle kombinasyon halinde kullanılabileceği öne sürülmüştür. 3-metilglutaril koenzim A inhibitörleri. Statinler, kolesterol düzeylerini düzenlemede önemli bir yöntem olsalar da, miyalji ve rabdomiyoliz ( 15 , 16 ) dahil olmak üzere iskelet kası üzerinde ve ayrıca bağırsak disbiyozu ile birlikte bağırsak mikrobiyotası homeostazı üzerinde önemli yan etkilere neden olabilirler ( 17 , 18) . ).

              Diyet lifi gibi prebiyotikler, bağırsak mikrobiyotasını modüle etme yetenekleri nedeniyle değerlendirilmiştir. Lactobacillus ve Enterococcus gibi koruyucu bakterilerin seçimini geliştirebilir ve bu nedenle kanseri önlemeye yardımcı olabilirler ( 19 – 21 ). Çalışmalar, kolorektal kanser riskinin işlenmiş ve işlenmemiş et tüketimi ile arttığını, ancak lif tüketimi ile baskılandığını göstermiştir. Gıda bileşimi, kolon mikroplarının metabolizması üzerindeki etkilerinden dolayı kanser riskini etkileyebilir. Bağırsak mikrobiyotası, enterik enzimler tarafından sindirilmeye dirençli kompleks diyet kalıntılarını fermente eder. Bu süreç mikrobiyota için enerji sağlar, ancak kısa zincirli yağ asitlerinin salınmasıyla sonuçlanır (22 ).

              Bununla birlikte, hiperlipidemiyi düzenlemeye yardımcı oldukları da gösterilmiştir ( 23 , 24 ). İki tür diyet lifi vardır: Pektin, frukto-oligosakkaritler ve yulaf β-glukan dahil olmak üzere çözünür lif; ve tam buğday ekmeği ve kahverengi pirinçte bulunan selüloz ve maya ve mantarlarda bulunan bazı β-glukan türleri dahil olmak üzere çözünmez lif. Bu lifler, bağırsak mikrobiyotası tarafından sindirilmeleri veya fermantasyonları yoluyla safra asitleri üzerinde hareket ederek ve lipid emilimini etkileyerek kolesterol metabolizmasını etkileyebilir ( 25 , 26) .). Ayrıca bütirat üretimi yoluyla bakteriyel seçilim yoluyla yerel mikrobiyal ortamı da etkileyebilirler. Bu nedenle, kronik enflamasyonda mukozal onarım ve proinflamatuar sitokinlerin azalması dahil olmak üzere kolon mukozasının yanı sıra mukozal ve sistemik bağışıklığı etkileyebilirler ( 28 – 32 ).

              Farklı lif türleri arasında, β-glukanlar, bağışıklık modülatörleri olarak iyi belgelenmiş aktiviteleri nedeniyle özel ilgi çekmiştir ( 33 , 34 ). İmmünomodülatör aktiviteler, anti-enfeksiyöz immüniteyi, anti-kanser immüniteyi ve hücresel ve hümoral savunma reaksiyonlarının tüm yönlerini içerir. Ek olarak, β-glukanlar, kolesterol seviyelerini azaltabilen nutrasötiklerdir ( 35 , 36 ). Bu nedenle, β-glukanlar, diyet takviyesi ve genel sağlığı iyileştirmek için en iyi çözünür lif türü olabilir. Mevcut derlemenin amacı, kolesterol seviyelerini düzenleme potansiyellerini değerlendirmek için diyet lifleri ve β-glukanların çeşitli yönleriyle ilgili en güncel bilgileri değerlendirmektir.

              Git: 2. β-glukanlar


              β-glukanlar da dahil olmak üzere çeşitli hastalıkları önleyebilen veya tedavi edebilen doğal ürünler tanımlanmıştır. Kimyasal olarak, β-glukanlar, maya ve algler dahil olmak üzere belirli mikroorganizmaların ve yulaf ve buğday gibi mantarlar ve tahıllar dahil olmak üzere belirli protistlerin hücre duvarının yapısal bileşiklerini oluşturan heterojen nişasta olmayan polisakkaritlerdir. β-glukanlar çözünmez veya çözünür olabilir. Çözünmeyen β-glukan lifleri β-(1,3/1,4)-D-bağlı glikoz birimlerinden oluşurken, çözünür viskoz β-glukan lifleri β-( 1 , 3 )/1,6)-D-bağlı içerir glikoz ( 37 ). β-glukanın temel moleküler yapısının şematik bir gösterimi şu şekilde sunulmuştur:Şekil 1.

              Şekil 1
              Glukan molekülünün temel moleküler yapısının şematik gösterimi. N ve N*, her yapının belirli tekrarlarının sayısını temsil eder.

              β-glukanların, HDL-C veya trigliserid düzeylerini etkilemeden, LDL-C içeren yüksek yoğunluklu olmayan bir lipoprotein -kolesterol (HDL-C olmayan) fraksiyonunun düzeylerini düşürdüğü gösterilmiştir (35 , 38-40 ) . β-glukanlar, 1960'lardan beri kan kolesterol seviyelerini düşürmek için kullanılmıştır ( 41 ). β-glukanlar ayrıca bağışıklık sisteminin etkinliğini artırmak için de kullanılır ( 42 , 43 ).

              Git: 3. β-glukanlar ve bağışıklık


              Son 40 yılda yapılan araştırmalar, β-glukanın biyolojik etkilerini ortaya koymuştur. Çeşitli çalışmalar, β-glukanların, diğer maddelerin yanı sıra, güçlü immünomodülatör özellikler sergiledikleri için ( 45 ), bağışıklık aktivitesini modüle edebilen maddeler olan ( 44 ) biyolojik yanıt düzenleyicilere dahil edilmesi gereken önemli maddeleri temsil ettiğini göstermiştir . Bu immünomodülatör özellikler öncelikle ekstrakte edildikleri kaynağa bağlıdır; hayvanlarda ve insanlarda yürütülen ve maya β-glukanlarının oral yoldan uygulanmasının bağışıklık sistemi üzerinde tahıldan türetilen β-glukanlara göre daha büyük bir etkiye sahip olduğunu doğrulayan çalışmalar ( 45 – 48)). β-glukan solucanlardan insanlara kadar tüm türlerde aktiftir ve hümoral ve hücresel bağışıklığı uyarabilir ( 45 ), diyabeti metabolik olarak düzenleyebilir ( 49 ), yara iyileşmesini teşvik edebilir ( 50 ), psikofiziksel stresi azaltabilir ( 51 ), kronik yorgunluğu azaltabilir sendromu ( 52 ) ve kanser gelişimini engeller ( 53 , 54 ). β-glukanın bağışıklık sistemi üzerindeki etkileri şu şekilde özetlenmiştir:Şekil 2A. β-glukanın bağışıklık sistemi üzerindeki etkilerine yönelik klinik deneyler şimdi yapılmıştır ( 55 , 56 ) ve β-glukanların sadece bağışıklık sistemini etkilemediği, aynı zamanda kolesterol seviyelerini de düşürebildiği gösterilmiştir. Sadece yulafta bulunan β-glukanlar değil, farklı tipte β-glukanlar da kolesterol seviyelerini düşürebilir.

              şekil 2
              β-glukanın bağışıklık ve kolesterol dengesi üzerindeki etkilerinin basitleştirilmiş gösterimi. (A) β-glukanlar, doğuştan gelen bağışıklık hücrelerinin yüzeyinde eksprese edilen reseptörlerle ve opsonize edilmiş hücrelerin iC3b/CR3 tamamlayıcı kompleksi ile etkileşime girerek, doğal ve kazanılmış bağışıklığı içeren bağışıklık uyarımı ile sonuçlanır. (B) β-glukanların lif görevi görerek bağırsağın mukozal yüzeyinde bir jel oluşturabileceği varsayılmaktadır. Bu, safra tuzlarının emilmesini engelleyerek karaciğerde safra tuzu neo-sentezini uyarır. Artan safra tuzları, dolaşımdaki kolesterolün kullanımını aktive ederek kandaki seviyelerini düşürür. NK, doğal öldürücü hücreler; CR3, tamamlayıcı reseptör tipi.

              Başlangıçta, β-glukanların etkilerini araştıran çalışmalar, çözünmeyen β-glukanları değerlendirdi; β-glukan-reseptör etkileşimlerini değerlendiren çalışmalar daha sonra yapılmıştır. β-glukanlarla etkileşime giren en önemli reseptörler arasında dektin-1, kompleman reseptörü tip 3 [CR3; farklılaşma kümesi (CD)11b/CD18] ve langerin olarak da bilinir. Dektin-1, nötrofiller, makrofajlar ve dendritik hücrelerde en yüksek ekspresyon seviyelerine sahip, lökositlerde bulunan bir tip II transmembran proteinidir ( 57 ). Langerin iki ana kısımdan oluşur: Karbonhidrat tanıyan bölge ve trimmer oluşturabilen bölge ve bu reseptör en yaygın olarak Langerhans hücrelerinde eksprese edilir ( 58) .). CR3, integrin β2 ailesinin bir parçasını oluşturan bir reseptördür. Çoğunlukla nötrofiller, makrofajlar ve doğal öldürücü hücrelerde bulunur, ancak kemik iliği progenitör hücrelerinde de bulunur ( 59 ). Opsonize edilmiş hedef hücrelerde tamamlayıcı iC3b ile etkileşimi takiben CR3 reseptörü tarafından varsayılan özel konfigürasyon, sitotoksik aktivasyona aracılık eder ( 60 ). CR3'ün β-glukan bağlanması ve etkisindeki önemi, CR3-nakavt farelerin β-glukan direnci ile doğrulandı ( 61 ). β-glukanların reseptörleri ile moleküler etkileşimlerine ilişkin daha ayrıntılı bilgiler yakın zamanda yapılan kapsamlı bir incelemede belgelenmiştir ( 62 ).

              β-glukan-hücre etkileşimini takiben aktive olan sinyal yolaklarını araştıran deneysel çalışmalar, nükleer faktör NF-κB'nin, NF-κB kinaz β aktivitesinin inhibitörü aracılığıyla ve B'de k hafif polipeptit gen arttırıcı faktörünün fosforilasyonu ve bozunmasının değiştirilmesini takiben aktive edildiğini göstermiştir. -hücre inhibitörü a (IkBa) ( 63). β-glukan, IkBa'nın fosforilasyonunda ve NF-κB'nin aktivasyonunda müteakip düşüşler ile IKK3 kinaz aktivitesinin modülasyonu yoluyla polimikrobiyal sepsise yanıtı değiştirebilir. Ek olarak, dektin-1 reseptörü üzerinde tirozin-protein kinaz SYK'nın (Syk) tutulumu doğrulandı. β-glukan bağlanmasını proto-onkogen tirozin-protein kinaz Src tarafından dektin-1'in fosforilasyonu takip eder. Sonuç olarak, Syk aktive edilir ve ardından CARD9-Bc110-Malt1 kompleksini aktive eder ( 64). Syk'in aşağı akış sinyalleşmesinin aktivasyonuna aracılık ettiği gösterildi; hücre dışı düzenlenmiş kinaz 1/2 ve p38a mitojenle aktive olan protein kinaz (MAPK) kaskadının indüklenmesi; mitojen ve stresle aktive olan protein kinazlar 1 ve 2'yi aktive etmek ve ardından cAMP yanıt elemanı bağlayıcı proteini fosforile etmek. Hücre dışı düzenlenmiş kinaz 1/2 ve p38a mitojenle aktive olan protein kinaz (MAPK) yollarının tutulumu tanımlandı ( 65 ). Ayrıca, β-glukan ve bununla ilişkili sinyal yolları daha önce değerlendirilmiştir ( 66). Bununla birlikte, β-glukan bağlanmasının ardından meydana gelen hücre içi sinyalleşmeye ilişkin mevcut anlayış eksik kalmaktadır. β-glukanı bağlayabilen çok fazla rakip reseptör olabilir veya birkaç farklı kaynaktan izole edilen farklı tipte β-glukanlar önceki çalışmalarda kullanılmış olabilir ve bu da sonuçları zorlaştırır.

              Git: 4. Temel moleküller olarak kolesterol ve safra asitleri


              Kolesterol, organizmaların hayatta kalması için önemli olan biyolojik olarak aktif maddelerin kaynağıdır ve vücutta çok önemli bir role hizmet eder; bu nedenle, kolesterol tek taraflı olarak kınanmamalıdır. Diğer fosfolipid maddelerle birlikte kolesterol, hücre zarlarının temel yapısal bileşenlerini oluşturur ve bunların biyokimyasal aktivitelerine katılır. Daha az bir ölçüde, kolesterol ayrıca hücre içi organellerin zarlarında ve kolesterolün %70'inin kolesteril esterler oluşturmak üzere yağ asitleri ile esterlendiği kan plazmasında bulunan lipoproteinlerde bulunur. Beyin dokusu vücuttaki kolesterolün ~%25'ini içerir ( 67 ). Kolesterol karaciğerde sentezlenir ve safra asitleri, steroid hormonları ve D vitamini oluşumu için gereklidir ( 68). Daha sonra enerji metabolizmasını ve genel enerji harcamasını düzenlemeye dahil olur; örneğin, safra asitlerine dönüşmesi ve bağırsak mikrobiyomunu şekillendirmesi yoluyla soğuğa maruz kalmanın ardından adaptif termojenezi teşvik eder ( 69 ). Birincil safra tuzları, kolik asit ve kenodeoksikolik asit üretmek için kolesterolün oksidasyonu yoluyla karaciğerde üretilir. Bu ürünler daha sonra taurin ve glisin ile konjuge edilerek taurokolik ve glikolik asitler üretilir ve safraya girdikten sonra pankreatik lipaz ile birlikte lipid metabolizmasında ve enerji harcamasında kullanılırlar (70 ) .

              Eksojen kolesterol vücuda hayvansal gıdalarla girer. LDL'ye bağlanır ve hücrelere, LDL-C'nin daha sonra yutulan hücre yüzeyi reseptörlerine bağlanmasını içeren reseptör endositozu yoluyla girer ( 71 ). Safra asitlerinin enterohepatik dolaşımı fizyolojik olarak önemlidir. Safra asitleri bağırsaktan karaciğere verimli bir şekilde yeniden emilir ve bu safra asitlerinin sadece %5-20'si dışkıda kaybolur. Daha büyük miktarlarda safra asitleri kaybedilirse, karşılık gelen miktarın karaciğerde yeniden sentezlenmesi gerekir ( 72) ve yeni sentezlenen safra asitlerinin kaynağı olarak kan kolesterol seviyelerini düşürür. Bu nedenle, safra asitlerinin fekal atılımının artmasına yol açan tüm süreçlerin kan kolesterol seviyelerini düşürdüğünü akılda tutmak önemlidir. Safra asitlerinin enterohepatik dolaşımı, öncelikle sütte bulunan ve 'sabun maddeleri' olarak bilinen bağırsak safra asitleriyle çözünmeyen bileşikler oluşturan serbest kalsiyum iyonları aracılığıyla azaltılır. Bu, dolaşımdaki kolesterol seviyelerinin potansiyel olarak düşmesine yol açarak karaciğerde safra asitlerinin neo-senteziyle sonuçlanır ( 73 ). β-glukanlar da dahil olmak üzere çeşitli kökenlerden gelen diyet liflerinin enteral safra asitlerine bağlandığı ve böylece bunların dışkıya atılımını teşvik ettiği öne sürülmüştür. Bununla birlikte, kolesterol ile bağlantıları farklı bir prensibe dayanmaktadır (Şekil 2B).

              Git: 5. Kolesterol formları


              Kolesterol, tüm hayvan yaşamı için gerekli olan bir moleküldür; bu nedenle vücuttaki her hücre, mevalonat yolu ile başlayan ve lanosterol dönüşümü ile biten karmaşık bir süreçle kolesterolü sentezleyebilir. Kolesterol, hücresel zarların bir bileşeni ve steroid hormonları ve safra tuzu sentezi için bir baz dahil olmak üzere faydalı biyolojik özellikler sergileyen önemli bir maddedir. Organizmada bulunan daha fazla kolesterol formu vardır, ancak sağlıkla ilgili en önemli moleküller LDL-C ve HDL-C'dir. Kanda bulunan diğer lipoprotein türleri şilomikronları, çok düşük yoğunluklu lipoproteinleri (VLDL) ve orta yoğunluklu lipoproteinleri (IDL) içerir ( 74 ).). Farklı lipoproteinlerde bulunan kolesterol aynıdır, ancak bazıları doğal serbest alkol formunda bulunurken diğerleri yağ asil esterleri olarak bulunur. Lipoprotein partikülleri, hücre zarlarında eksprese edilen spesifik reseptörler tarafından bağlanan kompleks apolipoproteinler tarafından düzenlenir ( 75 ). Kolesterol ve özellikle LDL'nin genellikle en zararlı moleküller olduğu kabul edilirken, non-HDL-C'nin artan kalp hastalığı riskiyle ilişkili bir kan lipid modelini tanımlamak için yaygın olarak kullanılan bir belirteç haline geldiğini not etmek önemlidir (76 ) . . Çocuklarda ve yetişkinlerde non-HDL-C, HDL-C ile ters ilişkilidir ( 77 , 78). Gerçekten de, HDL-olmayan-C'nin, hiperkolesterolemili hastaları tedavi etmek için birincil terapötik hedef olarak LDL-C'nin yerini alabileceği öne sürülmüştür ( 79 ). Ulusal Kolesterol Eğitim Programı şu anda hiperkolesterolemili hastalarda HDL-K dışı seviyelerin düşürülmesinin ikincil bir lipid düşürücü hedef olmasını önermektedir ( 80) .). Visseral obezite, diabetes mellitus ve metabolik sendrom insidansı artmaya devam ettikçe, non-HDL-C düzeylerinin düşürülmesi giderek daha önemli bir hedef haline gelmektedir. HDL seviyeleri aterosklerotik hastalık ile ters orantılıdır; bu nedenle HDL-C ve HDL'nin majör apolipoprotein (apoAI) düzeylerini artırmaya yönelik çalışmalar devam etmektedir. p38 MAPK yolağının inhibe edilmesi veya apolipoprotein mimetiklerinin uygulanması dahil olmak üzere potansiyel yeni tedavilerin, farelerde ve insanlarda kolesterolü düşürmede etkili olduğu bulundu ( 81 , 82 ).

              Kolesterol, yalnızca kandaki konsantrasyonları yükseldiğinde, özellikle oksitlenmiş LDL formunun (ox-LDL) seviyeleri yükseldiğinde organizmalara zarar verebilir ( 83 ). Bu, arter duvarında uzun süreli kronik iltihaplanmaya neden olabilir ve bu da kolesterol depolanmasının artmasına neden olur. Kolesterolü karaciğere taşıyan HDL, zıt etkiye sahiptir ve ox-LDL'nin aterojenik etkisini azaltır ( 84 ). İnsanlarda ( 85 ) ve bazı hayvanlarda ( 86 , 87)), ateroskleroz, vücudun farklı bölgelerinde arteriyel düzeyde aterom plak oluşumu ile sonuçlanan, fokal lezyonların indüklenmesinden sonra gelişen bir hastalıktır. İskemik kalp hastalığı olarak da bilinen koroner damar tıkanıklığı ve koroner arter hastalığının önemli bir nedenidir ( 88 , 89 ). Gistera ve Hansson ( 90 ) ve Jonsson ve Backhed ( 91 ) tarafından yapılan iki derleme, aterom lezyonu gelişiminin karmaşıklığını, olay sırasını ve kronik enflamasyon ve artan kolesterol seviyeleriyle beslenen makrofaj aktivitesi gibi altta yatan etki mekanizmalarını tartışır. mikrobiyomun aterogenez üzerindeki etkisinin yanı sıra.

              Git: 6. Diyet liflerinin hipokolesterolemik etkileri


              Şu anda kullanılan kolesterol düşürücü ilaçların hiçbiri yan etkisiz değildir. Buna karşılık, β-glukanlar da dahil olmak üzere farklı diyet lifi türlerinin önemli yan etkilere neden olmadan sağlık üzerinde olumlu etkileri olduğu genel olarak kabul edilmektedir ( 92 ). Hayvanlarda yapılan deneysel çalışmaların ve insanlar üzerinde yapılan klinik çalışmaların sonuçları, diyet lifi takviyelerinin yalnızca genel sağlığı iyileştirmekle kalmayıp aynı zamanda KVH, kanser ve tip 2 diyabet dahil olmak üzere yaşam tarzıyla ilişkili çeşitli kronik hastalık riskini de azalttığını göstermiştir (93) .), bunların hepsinin halk sağlığı ve genel olarak toplum üzerinde büyük etkisi vardır. Çeşitlilikleri nedeniyle, farklı diyet lifi türlerini doğru bir şekilde tanımlamak zor olmuştur. Bu, diyet lifi için uluslararası bir yasal tanım elde etmek için gerekli olan 10 yıllık süreçle örneklendirilebilir ( https://www.fsis.usda.gov/wps/portal...airs/us-codex- alimentarius/recent-delegation-reports/delegate-report-31st-session-ccnfsdu/ct_index ) tarafından Codex Alimentarius Komisyonu ( 94 ).

              Önceleri, çözünür diyet lifinin kandaki lipit ve kolesterol seviyelerini düşürdüğü ve çözünmeyen diyet lifinin yalnızca dışkı hacmine katkıda bulunduğu düşünülüyordu. Bununla birlikte, şimdi bu etkilerin, lifin viskozite derecesine ve fermantasyon kapasitesine bağlı olduğu gösterilmiştir ( 95 ). Bu nedenle, diyet lifi tanımı, benzer özelliklere sahip tüm karbonhidrat türlerini ve nişastalar gibi diğer dirençli maddeleri içerecek şekilde genişletilmiştir. İnce bağırsakta enzimatik sindirime direnen çözünür diyet lifi emilmez; kalın bağırsakta kısmen veya tamamen fermente edilir ( 38 , 96 ).

              Diyet lifinin hipokolesterolemik etkileri hala tam olarak anlaşılamamıştır. Çözünür diyet lifinin mide boşalmasını uzatan, trigliseritlerin ve kolesterolün bağırsak boyunca taşınmasını engelleyen ve toplam LDL-lipoprotein konsantrasyonlarını azaltan viskoz çözeltiler oluşturma yeteneğine atfedilmiştir (97 ) . Luminal içeriğin artan viskozitesinin sonuçları, su tabakasının kalınlığının artması ve bağırsak lümeninden kolesterol alımının azalmasıyla kendini gösterir ( 98 ).

              Diyet lifi safra asitlerine, monogliseritlere, serbest yağ asitlerine ve kolesterole bağlanabilir. Diyet lifi ayrıca bu kimyasal maddelerin emilimini azaltır ve dışkıyla atılımını artırır ( 99 , 100 ). Çözünmeyen diyet lifinin yapısı, safra asitlerine doğrudan bağlanmalarını sağlar ve bu şekilde kan kolesterol seviyelerini düşürebilirken, çözünür diyet lifi kimusun viskozitesini artırabilir, böylece safra asidi difüzyonunu azaltabilir (101 ) . Mantarlardan elde edilen diyet lifi fraksiyonları da kolesterolle ilişkili gen ekspresyonunu modüle edebilir ( 34 ). Ayrıca, β-glukanlarla tedavinin yağlı karaciğer gelişimini önlediği öne sürülmüştür ( 102 ).

              Diyet lifi, lipid ve karbonhidrat metabolizmasını düzenleyen genlerin ifadesini etkiler. Dirençli nişasta, fruktanlar, inülin ve β-glukanların, enerji alışverişinde yer alan anahtar bir enzim olan AMP ile aktive olan protein kinazın (AMPK) fosforilasyonunu etkilediği gösterilmiştir (103 , 104 ) . Ayrıca, daha yüksek kan HDL konsantrasyonlarının KVH'ye karşı koruma sağladığı iyi bilinmektedir. ApoAI, arteriyel endotelde AMPK'yi aktive eder ve nitrojen oksit sentazın fosforilasyonunu ve aktivitesini arttırır ( 105 ).

              Çekum ve kalın bağırsaktaki anaerobik bağırsak bakterileri, ince bağırsaktan etkilenmeden geçen sindirilemeyen karbonhidratların fermantasyonunun son ürünleri olarak kısa zincirli yağ asitleri (SCFA'lar) üretirler (106 , 107 ) . Bağırsaktan üretilen bu SCFA'lar, enerji metabolizması ve bağışıklık üzerinde çok sayıda etki gösterir ( 108 – 110 ). SCFA'lar, G-protein-bağlı serbest yağ asidi reseptörleri (FFA'lar) 2 ve 3 aracılığıyla bağışıklık sistemini etkiler. FFA2, birincil olarak lökositlerde ve kolonik L-hücrelerinde ve ayrıca kısmen adipositlerde ifade edilirken, FFA3 birincil olarak adipositlerde ifade edilir (111) .). β-glukanlar, karbonhidrat bağlayıcı alanlara sahip örüntü tanıma reseptörleri sergileyen mukozal makrofajlar ve dendritik hücreler gibi immünokompetan hücrelerle doğrudan etkileşime girebilir, ardından IL-12'de bir azalmaya ve toll benzeri modülasyon yoluyla IL-10 üretiminde artışa neden olabilir. reseptör sinyali ( 110 , 112 ); bu, bir anti-inflamatuar fenotip ile tutarlıdır. Aksine, diyet lifinin metabolizma ve bağışıklık üzerindeki etkisi dolaylı olabilir; örneğin, bir SCFA kaynağı olarak hareket edebilirler ( 28 , 113 ). Bağırsaktaki yağ asitleri ile birlikte kolesterolün enterositlere alınması, pasif taşıma ve taşıyıcı proteinler aracılığıyla gerçekleştirilebilir ( 114 , 115) .). Sterol düzenleyici element bağlayıcı proteinler la, 1c ve 2 olarak bilinen üç anahtar transkripsiyon faktörü, kolesterol ve yağ asitlerinin sentezini düzenleyen genlerin ekspresyonunu belirler ( 116 , 117 ). Diyet lifi, bu taşıyıcı proteinler için genlerin ekspresyonunu azaltabilir: Lipid metabolizmasını düzenleyen sterol düzenleyici element bağlayıcı transkripsiyon faktörü ( SREBF )1 ve kolesterol sentezini düzenleyen SREBF2 ( 36 , 118 , 119) .). Bu nedenle, diyet lifi ile kandaki LDL seviyelerinin düşürülmesinde yer alan potansiyel mekanizmalar arasında, doğrudan glukanbiliyer tuz kompleksleri veya absorpsiyonu engelleyen viskoz bir tabaka oluşumu yoluyla safra tuzlarının bağırsaktan β-glukanlar tarafından adsorpsiyonunun azaltılması desteklenir. çalışmaların çoğunda ( 40 , 41 , 119 ). Gerçekten de safra tuzlarının karaciğer tarafından neosentezi, hepatik serbest kolesterolün kullanımını indükler. Kolesterol seviyelerinin düşürülmesi, orijinal koşulları geri yüklemek için 7-a-hidroksilaz, 3-hidroksi-3-metilglutaril koenzim A redüktaz ve LDL-C reseptörlerinin yukarı regülasyonunu indükler ( 120). Bu, çeşitli çalışmalarda bildirilen β-glukanlar ve diğer diyet lifleri tarafından LDL'nin düşürülmesini açıklayabilir, ancak bazı meta-analizler β-glukanların HDL ve LDL kolesterolü etkilediğini bildirmektedir (35 , 118 – 121 ) . Aynı zamanda, β-glukanlar, değişen kolesterol seviyeleri tarafından ortaya çıkan proinflamatuar sinyalleri azaltabilir.

              Git: 7. Hayvan çalışmaları


              İnsan CVD'sinin altını çizen mekanizmaları daha etkili bir şekilde anlamak için uygun hayvan modelleri gereklidir. Şu anda ideal bir hayvan modeli olmamasına rağmen, mevcut modellerin karşılaştırmalı olarak incelenmesi, patolojik değişikliklerin sıralı başlangıcının anlaşılmasını geliştirebilir; hastalığın başlangıcından aterosklerotik plak gelişiminin son aşamalarına kadar. Diyabetik hayvanlarda artan diyet lifi alımının, glikoz gibi besinlerin bağırsak emilimini azaltabileceği gösterilmiştir ( 97 , 122 ). Kirby ve diğerleri ( 123), yulaf kepeği ile takviye edilmiş bir diyet alan hiperkolesterolemik erkeklerde serum kolesterol konsantrasyonunun %13 oranında azaldığını ve plazma LDL-C seviyelerinin %14 oranında azaldığını, HDL-C konsantrasyonlarının ise değişmeden kaldığını gösterdi. β-glukanların hipokolesterolemik etkileri, arpa ile takviye edilmiş bir diyetle beslenen etlik civcivlerde doğrulanmıştır ( 124 ). Ayrıca, diyabetik sıçanların arpa ile takviye edilmiş yüksek lifli bir diyetle beslenmesi, sırasıyla pirinç ve mısır nişastasından oluşan düşük ve çok düşük lifli diyetlerle beslenen farelere kıyasla plazma glikoz konsantrasyonlarını önemli ölçüde iyileştirdi ve kolesterol seviyelerini düşürdü (125 ) . Altın Suriye hamsterleri, aterogenez sırasında meydana gelen vasküler değişiklikleri incelemek için uygun bir hayvan modelidir ( 126).). Bu hamsterlerin bir takım avantajları vardır: İnsanlarda olduğu gibi, plazmadaki birincil kolesterol taşıyıcıları LDL'dir, lipoprotein metabolizmaları insanlarınkine benzer 84 ve LDL reseptör geni, insanlardaki LDL genine benzer. Lim ve arkadaşları ( 127 ), polikan olarak bilinen maya benzeri mantar Aureobasidium pullulans'tan β-glukanları , yüksek yağlı bir diyetle indüklenen bir hamster deneysel hiperlipemi hayvan modeline uyguladı. Yazarlar, polikanın yüksek yağlı bir diyetin neden olduğu aterosklerotik etkileri, hiperlipemiyi ve hepatik hasarı azalttığı sonucuna varmışlardır. Yulaf ve arpadan izole edilen β-glukanları kullanan bir hamster hiperkolesterolemi modeli üzerine yapılan önceki çalışmalar da bunların yararlı hipolipidemik ve anti-aterosklerotik etkilere neden olduğunu belirlemiştir.128 , 129 ). Başka bir çalışma, β-glukan tedavisinin, kolesterol açısından yüksek bir diyetin neden olduğu iltihabı azalttığını buldu ( 130 ). Sıçan deneysel modelinde, β-glukanlar toplam kolesterol, trigliserit ve malondialdehit düzeylerini %42 azalttı ( 131 ). Ayrıca hamsterları model olarak kullanan Tong ve arkadaşları ( 132), diyetteki β-glukanların dışkı lipidlerinin atılımını teşvik ederek ve 3'-hidroksi-3-metil-glutaril-koenzim A redüktaz ve CEP7A1 aktivitelerini düzenleyerek plazma LDL-C konsantrasyonunu azalttığını buldu. Mevcut yazarlar tarafından yapılan bir çalışmada, mayadan türetilen β-glukan 300, deneysel olarak indüklenen hiperkolesterolemili farelerde toplam kolesterol seviyelerini belirgin şekilde düşürdü. Diğer üç β-glukan, Krestin, ImmunoFiber ve Now glukan ile takviye, etkileri azaltsa da benzer indükledi ( 133 ). Bildiğimiz kadarıyla, bu çalışma birkaç farklı β-glukanın etkilerini doğrudan karşılaştıran ilk çalışmaydı. En etkili glukan mayadan türetilmiş olduğundan, artan lif alımını takiben bu tür sonuçların safra asidi emilimindeki müteakip bir azalma ile açıklanabileceği iddiasını desteklemektedir (134 ). Bildiğimiz kadarıyla, apolipoprotein-E nakavt farelerde β-glukanların kolesterol seviyeleri üzerindeki etkilerini henüz araştıran hiçbir çalışma yoktur ( 135 , 136 ).

              Git: 8. İnsan çalışmaları


              Hiperkolesterolemili erkeklerde β-glukanların çözünebilir formlarının etkilerini araştıran uzun süreli klinik çalışmalar, bunların kan kolesterol düzeylerini düşürdüğünü göstermiştir ( 137-139 ) . 1989'da Newman ve arkadaşları ( 140 ), suda çözünür lif açısından zengin olan bazı arpa çeşitlerinin erkeklerde hipokolesterolemik etkiye sahip olduğunu gösterdi. Birkaç gönüllü erkek, 28 gün boyunca normal diyetlerine buğday veya arpa kepeği diyet takviyeleri eklemek için rastgele atandı.

              Buğday takviyeleri tüketenler, tedavi öncesi ile karşılaştırıldığında serum toplam kolesterol ve LDL-C düzeylerini önemli ölçüde artırdı. Tedavi öncesi ortalama kolesterol seviyelerine sahip olan ve arpa takviyeleri alan deneklerin kolesterol seviyeleri önemli ölçüde değişmedi; ancak trigliserit ve LDL-C seviyeleri, tedavi öncesinde kolesterol seviyeleri artmış olan deneklerde düşmüştür. Son 20 yılda yayınlanan araştırmalar, kan trigliserit ve kolesterol konsantrasyonlarının arttığı insanlarda diyetlere β-glukanlarla takviye edilmesinin ardından LDL-C düzeylerinin düştüğünü göstermiştir (119 , 120 , 141 – 151 ) ; ancak bu etkilerin β-glukanlardan kaynaklandığı doğrulanmamıştır ( 152– 154 ). Ho ve arkadaşları ( 35 ), 615 sağlıklı ve hiperkolesterolemik katılımcıyı içeren 14 çalışmanın sistematik bir incelemesini ve meta-analizini yayınlayarak, arpa β-glukanlarının HDL-C düzeylerini düşürmediği halde LDL-C'yi azalttığına dair kanıtları özetledi. Ortalama 6,5 ​​ve 6,9 ​​g/gün β-glukan dozuyla desteklenen diyetler, kontrol diyetlerine kıyasla LDL-C ve HDL-dışı-K düzeylerini %7 azalttı. Önceki iki meta-analiz, arpa β-glukanlarının kolesterol düşürücü etkisini doğrulamıştır. Bir tanesi , yedi çalışmanın sonuçlarına göre günde ortalama 7 g β-glukan dozunu takiben LDL-K düzeylerinde 0,26 mmol.l -1 azalma olduğunu bildirdi ( 155 ). 2010 yılında yayınlanan ikinci bir meta-analiz, LDL-C'nin 0,27 mmol.l azaldığını gösterdi.5 g/gün medyan β-glukan dozunu takiben -1 ( 156 ).

              Arpa β-glukanlarının hiperkolesterolemili hastalarda apolipoprotein B düzeylerini düşürdüğü genel olarak kabul edilmektedir ( 157 ). Bununla birlikte, β-glukanların farklı metabolik fenotiplere sahip hastalardaki etkilerinin yanı sıra bitkinin genotipine, çevre koşullarına ve kompozisyonuna bağlı olarak arpadaki β-glukan içeriği üzerindeki etkilerini araştırmak için daha fazla çalışmaya ihtiyaç vardır. bitkinin yetiştiği toprağın ( 158 ). ≥4 hafta boyunca ortalama doz osf 6.5 g/gün arpa β-glukan ile tedavi, kan kolesterol konsantrasyonları yüksek olan ve olmayan kişilerde yararlı etkilere sahip olabilir ( 35 , 159). Kan kolesterol konsantrasyonlarını düşürmek için uygun bir diğer p-glukan kaynağı, farklı mantar türlerini içerebilir. Mantarlardan elde edilen β-glukanların altında yatan mekanizmalar henüz açıklanmamıştır. Mantar tüketiminin hayvanlarda kan kolesterol seviyelerini düşürdüğü ( 160 , 161 ) ve artan mantar alımının KVH riskini azaltabileceği defalarca doğrulanmıştır . Klinik deneyler, çözünür β-glukanların tüketiminin, HDL-C ve trigliserit düzeylerini etkilemeden, LDL-C dahil olmak üzere toplam kolesterol düzeylerini düşürdüğünü de doğrulamıştır ( 38 , 39 , 118 ). Fare modelinde yürütülen önceki bir çalışma ( 162), mantarların hücre duvarından ekstrakte edilen ve zeytinyağı ile birleştirilen, sağlık üzerindeki yararlı etkileriyle bilinen Akdeniz diyetiyle ilişkili yeni çözünmez diyet lifi kitin-glukanın (163), seviyelerini önemli ölçüde azalttığını göstermiştir . Ox-LDL, bu kombinasyonun CVD'li hastaları tedavi etmek için terapötik bir strateji olarak kullanılabileceğini düşündürmektedir. Ayrıca, hafif hiperkolesterolemili hastalarda, yüksek moleküler ağırlıklı β-glukanların serum kolesterol seviyelerini düşük moleküler ağırlıklı β-glukanlardan farklı şekilde azalttığı gösterilmiştir (164 ) . Viskozitedeki farklılıkların yanı sıra, CYP7A1rs3808607 polimorfizmi de test edilen bu iki glukanın farklı etkilerine katkıda bulunmuştur ( 164 ).

              Git: 9. Sonuçlar


              Son birkaç on yılda, diyette β-glukanlar da dahil olmak üzere artan lif düzeylerinin kolesterol düzeylerinde bir azalmaya yol açtığı öne sürülmüştür. Bununla birlikte, bu eylemin kesin mekanizmaları belirsizliğini koruyor. Aterosklerozun immünolojik yönlerini modüle etmede β-glukanın rolünü daha spesifik olarak tanımlamak için daha fazla araştırmaya ihtiyaç vardır. Mevcut inceleme, tüm diyet lifi formları arasında, doğal β-glukan moleküllerinin, dislipidemili hastaların tedavisinde bir yöntem olarak kullanım için en umut verici olduğu hipotezini güçlendirmektedir. β-glukan ve statin kullanımının etkileri arasında çok az doğrudan karşılaştırma olduğundan, statinlere ek olarak veya hatta bir alternatif olarak kullanılmak üzere şiddetli hiperkolesterolemisi olan hastalara artan β-glukan alımının önerilip önerilmediği belirsizliğini koruyor. bu tür hastalarda. Bununla birlikte, β-glukanlar, statinlerden farklı bir etki mekanizmasına sahip olduklarından daha etkili olabilir; statinler, kolesterol üretiminden sorumlu karaciğer enziminin etkisini bloke ederken, β-glukanlar, kolesterol seviyelerinin daha fizyolojik temelli yeniden dengelenmesini destekler.

              Git: teşekkürler


              Yazarlar Mikrobiyoloji Enstitüsüne (CZ; hibe no. RVO 61388971) ve UniCredit Bank (CZ) ve ARPA Foundation, Pisa (IT) bağışlarına teşekkür etmek isterler.

              Git: Dipnotlar


              Rekabet eden çıkarlar

              Yazarlar, rekabet eden çıkarları olmadığını beyan eder.


              Git: Referanslar

              1. Dünya Sağlık Örgütü . Kalp-damar hastalığı. 2016. [ Google Akademik ]
              2. Dünya Sağlık Örgütü . Obezite ve fazla kilolu bilgi sayfası. 2017. [ Google Akademik ]
              3. Dünya Sağlık Örgütü . Obezite ve fazla kilolu bilgi sayfası. 2016. [ Google Akademik ]
              4. CDC, Ulusal Kronik Hastalık Önleme ve Sağlığın Teşviki ve Geliştirilmesi Merkezi ve Kalp Hastalığı ve Felç Önleme Bölümü . Kalp Hastalığı Gerçekleri ve İstatistikleri. HKM; [ Google Akademik ]
              5. Murray CJ, Lopez AD. Nedene göre alternatif ölüm ve sakatlık tahminleri 1990–2020: Küresel Hastalık Yükü Çalışması. Lancet. 1997; 349 :1498–1504. doi: 10.1016/S0140-6736(96)07492-2. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              6. Oreopulos A, Padwal R, Kalantar-Zadeh K, Fonarow GC, Norris CM, McAlister FA. Kalp yetmezliğinde vücut kitle indeksi ve mortalite: Bir meta-analiz. Am Heart J.2008 ; 156 :13–22. doi: 10.1016/j.ahj.2008.02.014. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              7. Clark JM, Brancati FL. Obezite ile ilişkili kronik hastalıkların mücadelesi. J Gen Intern Med. 2000; 15 :828–829. doi: 10.1046/j.1525-1497.2000.00923.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              8. Oreopulos A, Ezekowitz JA, McAlister FA, Kalantar-Zadeh K, Fonarow GC, Norris CM, Johnson JA, Padwal RS. Vücut kompozisyonunun doğrudan ölçümleri ile kronik kalp yetmezliğinde prognostik faktörler arasındaki ilişki. Mayo Clin Proc. 2010; 85 :609–617. doi: 10.4065/mcp.2010.0103. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              9. Bose KS, Gupta SK, Vyas P. Hint popülasyonunda tip 2 diyabet için genetik olarak yüksek risk taşıyan adipositokin seviyeleri: Kesitsel bir çalışma. Uzman Diyabet Arş. 2012; 2012 :386524. doi: 10.1155/2012/386524. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              10. Olson NC, Callas PW, Hanley AJ, Festa A, Haffner SM, Wagenknecht LE, Tracy RP. Dolaşımdaki TNF-α seviyeleri, bozulmuş glukoz toleransı, artmış insülin direnci ve etnik köken ile ilişkilidir: İnsülin direnci ateroskleroz çalışması. J Clin Endocrinol Metab. 2012; 97 :1032–1040. doi: 10.1210/jc.2011-2155. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              11. Libby P, Ridker PM, Maseri A. Enflamasyon ve ateroskleroz. dolaşım. 2002; 105 :1135–1143. doi: 10.1161/hc0902.104353. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              12. Emanuela F, Grazia M, Marco de R, Maria Paola L, Giorgio F, Marco B. Obezite ve metabolik sendrom arasında bir bağlantı olarak iltihaplanma. J Nutr Metab. 2012; 2012 :476380. doi: 10.1155/2012/476380. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              13. Harland JI. Kolesterol düşürücü gıda kombinasyonları. Nutr Res Rev. 2012; 25 :249–266. doi: 10.1017/S0954422412000170. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              14. Johnston TP, Korolenko TA, Pirro M, Sahebkar A. Kardiyovasküler kalp hastalığının önlenmesi: Kolesterol yönetimi için umut verici nutrasötik ve nutrasötik olmayan tedaviler. Farmakol Arş. 2017; 120 :219–225. doi: 10.1016/j.phrs.2017.04.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              15. Chatzizisis YS, Koskinas KC, Misirli G, Vaklavas C, Hatzitolios A, Giannoglou GD. Statine bağlı miyopatiye yatkınlık oluşturan risk faktörleri ve ilaç etkileşimleri: Risk değerlendirmesi, önleme ve tedavi için çıkarımlar. İlaç Saf. 2010; 33 :171–187. doi: 10.2165/11319380-000000000-00000. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              16. Camerino GM, Musumeci O, Conte E, Musaraj K, Fonzino A, Barca E, Marino M, Rodolico C, Tricarico D, Camerino C, et al. Statinlerle tedavi gören hastalarda miyopati riski: Bir pilot çalışmada biyolojik belirteçlerin tanımlanması. Ön Eczacılık. 2017; 8 :500. doi: 10.3389/fphar.2017.00500. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              17. Caparros-Martin JA, Lareu RR, Ramsay JP, Peplies J, Reen FJ, Headlam HA, Ward NC, Croft KD, Newsholme P, Hughes JD, et al. Statin tedavisi, PXR'ye bağlı bir mekanizma yoluyla farelerde bağırsak disbiyozuna neden olur. Mikrobiyom. 2017; 5:95 . doi: 10.1186/s40168-017-0312-4. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              18. Verhaegh BP, de Vries F, Masclee AA, Keshavarzian A, de Boer A, Souverein PC, Pierik MJ, Jonkers DM. NSAID'ler ve proton pompası inhibitörlerinin birlikte kullanımı ile yüksek ilaca bağlı mikroskobik kolit riski. Beslenme Pharmacol Ther. 2016; 43 :1004–1013. doi: 10.1111/apt.13583. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              19. O'Keefe SJ. Diyet, mikroorganizmalar ve metabolitleri ve kolon kanseri. Nat Rev Gastroenterol Hepatol. 2016; 13 :691–706. doi: 10.1038/nrgastro.2016.165. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              20. Peters U, Sinha R, Chatterjee N, Subar AF, Ziegler RG, Kulldorff M, Bresalier R, Weissfeld JL, Flood A, Schatzkin A, et al. Kolorektal kanser erken teşhis programında diyet lifi ve kolorektal adenom. Lancet. 2003; 361 :1491–1495. doi: 10.1016/S0140-6736(03)13173-X. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              21. Mao QQ, Lin YW, Chen H, Qin J, Zheng XY, Xu X, Xie LP. Diyet lifi alımı, pankreas kanseri riski ile ters ilişkilidir: Bir meta-analiz. Asia Pac J Clin Nutr. 2017; 26 :89–96. [ PubMed ] [ Google Akademik ]
              22. Ohira H, Tsutsui W, Fujioka Y. Enflamasyon ve ateroskleroz için kulübe mikrobiyota savunma oyuncularındaki kısa zincirli yağ asitleridir. J Ateroskler Tromb. 2017; 24 :660–672. doi: 10.5551/jat.RV17006. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              23. Hernandez-Rodas MC, Valenzuela R, Videla LA. Alkolsüz yağlı karaciğer hastalığında beslenme ve diyet müdahalelerinin ilgili yönleri. Int J Mol Sci. 2015; 16 :25168–25198. doi: 10.3390/ijms161025168. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              24. Burton-Freeman B, Liyanage D, Rahman S, Edirisinghe I. Menopoz öncesi ve sonrası aşırı kilolu kadınlarda tokluk ve enerji alımında çözünür ve çözünmez diyet liflerinin oranları. Sağlıklı Yaşlanmayı Besleyin. 2017; 4 :157–168. doi: 10.3233/NHA-160018. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              25. Adam CL, Thomson LM, Williams PA, Ross AW. Çözünür fermente edilebilir diyet lifi (Pektin), yüksek yağlı diyete bağlı obez sıçanlarda kalori alımını, adipoziteyi ve lipidemiyi azaltır. PLoS Bir. 2015; 10 :e0140392. doi: 10.1371/journal.pone.0140392. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              26. Torcello-Gómez A, Fernández Fraguas C, Ridout MJ, Woodward NC, Wilde PJ, Foster TJ. Selüloz eterlerin sübstitüent modelinin ve moleküler ağırlığının farklı safra tuzları ile etkileşimler üzerindeki etkisi. Gıda İşlevi. 2015; 6 :730–739. doi: 10.1039/C5FO00099H. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              27. Meneses ME, Martinez-Carrera D, Torres N, Sánchez-Tapia M, Aguilar-López M, Morales P, Sobal M, Bernabé T, Escudero H, Granados-Portillo O, Tovar AR. Meksika Ganoderma lucidum'un C57BL/6 farelerinde hipokolesterolemik özellikleri ve prebiyotik etkileri. PLoS Bir. 2016; 11 :e0159631. doi: 10.1371/journal.pone.0159631. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              28. Hung TV, Suzuki T. Diyetteki fermente edilebilir lif, kolitli farelerde bağırsak bariyer kusurlarını ve iltihabı azaltır. J Nutr. 2016; 146 :1970–1979. doi: 10.3945/jn.116.232538. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              29. Zhong Y, Marungruang N, Fak F, Nyman M. İki tam tahıllı arpa çeşidinin düşük ve yüksek yağlı diyetler tüketen farelerde sekal SCFA, bağırsak mikrobiyotası ve plazma inflamatuar belirteçleri üzerindeki etkileri. Br J Nutr. 2015; 113 :1558–1570. doi: 10.1017/S0007114515000793. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              30. Luo Y, Zhang L, Li H, Smidt H, Wright AG, Zhang K, Ding X, Zeng Q, Bai S, Wang J, et al. Farklı diyet lifi türleri, BALB/c farelerinde kolonik bakteri topluluklarının bileşiminde ve öngörülen işlevlerinde spesifik değişiklikleri tetikler. Ön Mikrobiyol. 2017; 8 :966. doi: 10.3389/fmicb.2017.00966. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              31. Winglee K, Fodor AA. Diyet ve bağırsak mikrobiyomu arasındaki içsel ilişki: Güncel kanıtlar. Nutr Diyet Takviyesi 2015; 7 :69–76. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
              32. Jakobsdottir G, Xu J, Molin G, Ahrné S, Nyman M. Yüksek yağlı diyet, bütirat oluşumunu azaltır, ancak farelerde süksinat, iltihaplanma, karaciğer yağı ve kolesterolü artırırken, diyet lifi bu etkilere karşı koyar. PLoS Bir. 2013; 8 :e80476. doi: 10.1371/journal.pone.0080476. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              33. Vannucci L, Krizan J, Sima P, Stakheev D, Caja F, Rajsiglova L, Horak V, Saieh M. Glukanların immünostimülatör özellikleri ve anti-tümör aktiviteleri (İnceleme) Int J Oncol. 2013; 43 :357–364. doi: 10.3892/ijo.2013.1974. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              34. Chanput W, Reitsma M, Kleinjans L, Mes JJ, Savelkoul HF, Wichers HJ. β-Glukanlar, THP-1 makrofajlarının immün modülasyonunda rol oynar. Mol Nutr Gıda Arş. 2012; 56 :822–833. doi: 10.1002/mnfr.201100715. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              35. Ho HV, Sievenpiper JL, Zurbau A, Blanco Mejia S, Jovanovski E, Au-Yeung F, Jenkins AL, Vuksan V. The effect of yulaf β-glucan on LDL-cholesterol, non-HDL-cholesterol ve apoB for CVD risk azaltma: Randomize kontrollü çalışmaların sistematik bir incelemesi ve meta-analizi. Br J Nutr. 2016; 116 :1369–1382. doi: 10.1017/S000711451600341X. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              36. Caz V, Gil-Ramirez A, Largo C, Tabernero M, Santamaría M, Martín-Hernández R, Marín FR, Reglero G, Soler-Rivas C. Yenilebilir mantarlardan diyet lifi fraksiyonları ile kolesterolle ilişkili gen ekspresyonunun modülasyonu. J Tarım Gıda Kimyası 2015; 63 :7371–7380. doi: 10.1021/acs.jafc.5b02942. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              37. Barsanti L, Passarelli V, Evangelista V, Frassanito AM, Gualtieri P. β-glukanların biyolojik aktiviteleriyle bağlantılı kimya, fiziko-kimya ve uygulamalar. Nat Ürün Temsilcisi 2011; 28 :457–466. doi: 10.1039/c0np00018c. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              38. Anderson JW, Baird P, Davis RH, Jr, Ferreri S, Knudtson M, Koraym A, Waters V, Williams CL. Diyet lifinin sağlık yararları. Beslenme Rev. 2009; 67 :188–205. doi: 10.1111/j.1753-4887.2009.00189.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              39. Van Horn L, McCoin M, Kris-Etherton PM, Burke F, Carson JA, Champagne CM, Karmally W, Sikand G. Kardiyovasküler hastalığın diyetle önlenmesi ve tedavisi için kanıt. J Am Diyet Doç. 2008; 108 :287–331. doi: 10.1016/j.jada.2007.10.050. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              40. Vetvicka V, Vetvickova J. Mayadan türetilen beta-glukanların kan kolesterolü ve makrofaj işlevselliği üzerindeki etkileri. J İmmünotoksikol. 2009; 6 :30–35. doi: 10.1080/15476910802604317. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              41. de Groot A, Luyken R, Pikaar NA. Yulaf ezmesinin kolesterol düşürücü etkisi. Lancet. 1963; 2 :303–304. doi: 10.1016/S0140-6736(63)90210-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              42. Czop JK. Beta-glukan reseptörlerinin fagositoz ve metabolik aktivasyonda kan ve doku lökositleri üzerindeki rolü. Pathol İmmünopatol Res. 1986; 5 :286–296. doi: 10.1159/000157022. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              43. Estrada A, Yun CH, Van Kessel A, Li B, Hauta S, Laarveld B. Yulaf beta-glukanının in vitro ve in vivo immünomodülatör aktiviteleri. Mikrobiyoloji İmmunol. 1997; 41 :991–998. doi: 10.1111/j.1348-0421.1997.tb01959.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              44. Torrence PF. Biyolojik yanıt değiştiriciler: Hastalık müdahalesine yeni yaklaşımlar. Akademik Basın; Orlando: 1985. s. 397. [ Google Akademik ]
              45. Novak M, Vetvicka V. Beta-glukanlar, tarihçe ve günümüz: İmmünomodülatör yönler ve etki mekanizmaları. J İmmünotoksikol. 2008; 5 :47–57. doi: 10.1080/15476910802019045. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              46. ​​Vetvicka V, Vetvickova J. β1,3-Glucan: Silver bullet veya sıcak hava. Glycoscience'ı açın. 2010; 3 :1–6. [ Google Akademik ]
              47. Vetvicka V, Vetvickova J. Piyasada bulunan β-glukanların immünolojik etkilerinin karşılaştırılması: Bölüm III. Int J Clin Pathol. 2006; 2 doi: 10.15406/icpjl.2016.02.00046. [ CrossRef ] [ Google Akademik ]
              48. Würsch P, Pi-Sunyer FX. Viskoz çözünür lifin diyabetin metabolik kontrolünde rolü. Beta-glukan açısından zengin tahıllara özel vurgu yapan bir inceleme. Diyabet bakımı. 1997; 20 :1774–1780. doi: 10.2337/diacare.20.11.1774. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              49. Mosikanon K, Arthan D, Kettawan A, Tungtrongchitr R, Prangthip P. Maya β-glukan, aşırı kilolu ve obez deneklerde inflamasyonu ve bel çevresini modüle eder. J Diyet Takviyesi 2017; 14 :173–185. doi: 10.1080/19390211.2016.1207005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              50. Browder W, Williams D, Lucore P, Pretus H, Jones E, McNamee R. Gelişmiş makrofaj fonksiyonunun erken yara iyileşmesi üzerindeki etkisi. Ameliyat. 1988; 104 :224–230. [ PubMed ] [ Google Akademik ]
              51. Vetvicka V, Vetvickova J. Ağızdan verilen resveratrol, β-glukan ve C vitamini Moleküllerinin anti-stres etkisi . 2014; 19 :13724–13734. doi: 10.3390/molecules190913724. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              52. Vetvicka V, Vetvickova J. β-glukan murin modelinde kronik yorgunluk sendromunu hafifletir. J Nat Sci. 2015; 1 :e112. [ Google Akademik ]
              53. Sima P, Vannucci L, Vetvicka V. Glukanlar ve kanser: Tarihsel bakış açısı. Kanser Çeviri Med. 2015; 1 :209–214. doi: 10.4103/2395-3977.172860. [ CrossRef ] [ Google Akademik ]
              54. Barbieri A, Quagliariello V, Del Vecchio V, Falco M, Luciano A, Amruthraj NJ, Nasti G, Ottaiano A, Berretta M, Iaffaioli RV, Arra C. Gano-derma lucidum ekstraktının antikanser ve antiinflamatuar özellikleri üzerindeki etkileri melanom ve üçlü negatif meme kanseri tedavisi. Besinler. 2017; 9 ii:E210. doi: 10.3390/nu9030210. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              55. Richter J, Kral V, Svozil V, Rajnohova DL, Pohorska JI, Vetvicka V. Pasif içiciliğe maruz kalan çocuklar üzerinde transfer noktası glukan #300 takviyesinin etkileri, plasebo güdümlü çift kör klinik deneyler. J Beslenme Sağlığı. 2014; 1 :105. [ Google Akademik ]
              56. Vetvicka V, Richter J, Svozil V, Rajnohová Dobiášová L, Král V. Kronik solunum problemleri olan çocuklarda mayadan türetilen β-(1-3) glukanın plasebo odaklı klinik deneyleri. Ann Transl Med. 2013; 1:26 . [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
              57. Brown GD, Gordon S. Bağışıklık tanıma. Beta-glukanlar için yeni bir reseptör. Doğa. 2001; 413 :36–37. doi: 10.1038/35092620. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              58. Stambach NS, Taylor ME. Langerhans hücrelerinin C tipi bir lektini olan langerin ile karbonhidrat tanımanın karakterizasyonu. Glikobiyoloji. 2003; 13 :401–410. doi: 10.1093/glycob/cwg045. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              59. Allendorf DJ, Ostroff GR, BAran JT, et al. BTR 2003: Biyolojik Tehditleri Azaltmak ve Terörizmle Mücadele için Birleşik Bilim ve Teknoloji. Albuquesrque: New Mexico Üniversitesi; 2003. Oral WGP beta glukan tedavisi, radyasyon maruziyetinden sonra miyeloid iyileşmesini ve sağkalımı hızlandırır; sayfa 104–113. [ Google Akademik ]
              60. Ross GD, Vĕtvicka V. CR3 (CD11b. CD18): Çoklu ligand özgüllükleri ve işlevleri olan bir fagosit ve NK hücre zarı reseptörü. Hücre Exp İmmunol. 1993; 92 :181–184. doi: 10.1111/j.1365-2249.1993.tb03377.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              61. Xia Y, Vetvicka V, Yan J, Hanikyrová M, Mayadas T, Ross GD. Fare CR3'ün (CD11b/CD18) beta-glukan bağlayıcı lektin bölgesi ve bunun, iC3b-opsonize edilmiş hedef hücrelere yanıt olarak sitotoksik aktivasyona aracılık eden, reseptörün hazırlanmış bir durumunu oluşturma işlevi. J İmmunol. 1999; 162 :2281–2290. [ PubMed ] [ Google Akademik ]
              62. Legentil L, Paris F, Ballet C, Trouvelot S, Daire X, Vetvicka V, Ferrières V. β-(1→>3)-glukanların reseptörleriyle moleküler etkileşimleri. moleküller. 2015; 20 :9745–9766. doi: 10.3390/molecules20069745. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              63. Williams DL, Ha T, Li C, Laffan J, Kalbfleisch J, Browder W. LPS kaynaklı NFkappaB aktivasyonunun bir glukan ligandıyla inhibisyonu, IKKbeta kinaz aktivitesinin aşağı regülasyonunu ve IkappaBalpha'nın değiştirilmiş fosforilasyonunu ve bozunmasını içerir. Şok. 2000; 13 :446–452. doi: 10.1097/00024382-200006000-00005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              64. Rogers NC, Slack EC, Edwards AD, Nolte MA, Schulz O, Schweighoffer E, Williams DL, Gordon S, Tybulewicz VL, Brown GD, Reis e Sousa C. Dectin-1 tarafından Syk'e bağlı sitokin indüksiyonu yeni bir model ortaya koyuyor C tipi lektinler için tanıma yolu. Bağışıklık. 2005; 22 :507–517. doi: 10.1016/j.immuni.2005.03.004. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              65. Elcombe SE, Naqvi S, Van Den Bosch MW, MacKenzie KF, Cianfanelli F, Brown GD, Arthur JS. Dectin-1, IL-10 üretimini bir MSK1/2 ve CREB'ye bağlı yol aracılığıyla düzenler ve düzenleyici makrofaj belirteçlerinin indüklenmesini destekler. PLoS Bir. 2013; 8 :e60086. doi: 10.1371/journal.pone.0060086. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              66. Doğal biyolojik yanıt düzenleyiciler olarak Větvička V. (Beta)-glukanlar. Nova Bilim Yayıncıları A.Ş.; New York: 2013. [ Google Akademik ]
              67. Orth M, Bellosta S. Kolesterol: Merkezi sinir sistemi bozukluklarında düzenlenmesi ve rolü. Kolesterol. 2012; 2012 :292598. doi: 10.1155/2012/292598. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              68. Li T, Çan JY. Safra asidi ve kolesterol metabolizmasının PPAR'lar tarafından düzenlenmesi. PPAR Çöz. 2009; 2009 :501739. doi: 10.1155/2009/501739. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              69. Worthmann A, John C, Rühlemann MC, Baguhl M, Heinsen FA, Schaltenberg N, Heine M, Schlein C, Evangelakos I, Mineo C, et al. Farelerde soğuk kaynaklı kolesterolün safra asitlerine dönüşümü, bağırsak mikrobiyomunu şekillendirir ve adaptif termojenezi destekler. Nat Med. 2017; 23 :839–849. doi: 10.1038/nm.4357. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              70. Li T, Çan JY. Metabolik düzenleyiciler olarak safra asitleri. Curr Opin Gastroenterol. 2015; 31 :159–165. doi: 10.1097/MOG.0000000000000156. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              71. Kahverengi MS, Goldstein JL. LDL reseptörleri kolesterol ve aterosklerozu nasıl etkiler? Bilim Am. 1984; 251 :58–66. doi: 10.1038/scientificamerican1184-58. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              72. Russel DW. Safra asidi sentezinin enzimleri, düzenlenmesi ve genetiği. Annu Rev Biochem. 2003; 72 :137–174. doi: 10.1146/annurev.biochem.72.121801.161712. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              73. Kuipers F, Bloks VW, Groen AK. Metabolik kontrolde bağırsak sabun-safra asitlerinin ötesinde. Nat Rev Endokrinol. 2014; 10 :488–498. doi: 10.1038/nrendo.2014.60. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              74. Gibbons GF, Wiggins D, Brown AM, Hebbachi AM. Hepatik çok düşük yoğunluklu lipoproteinin sentezi ve işlevi. Biochem Soc Trans. 2004; 32 :59–64. doi: 10.1042/bst0320059. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              75. Davidson WS, Hilliard GM. Apolipoprotein AI'nın diskoidal yüksek yoğunluklu lipo-protein parçacıklarının kenarındaki uzamsal organizasyonu. J Biol Chem. 2003; 278 :27199–27207. doi: 10.1074/jbc.M302764200. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              76. de Oliveira Alvim R, Mourao-Junior CA, Magalhaes GL, de Oliveira CM, Krieger JE, Mill JG, Pereira AC. HDL olmayan kolesterol, kentsel bir Brezilya popülasyonundaki menopoz sonrası kadınlarda artan arteriyel sertlik riskinin iyi bir göstergesidir. Klinikler (Sao Paulo) 2017; 72 :106–110. doi: 10.6061/clinics/2017(02)07. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              77. Gordon DJ, Probstfield JL, Garrison RJ, Neaton JD, Castelli WP, Knoke JD, Jacobs DR, Jr, Bangdiwala S, Tyroler HA. Yüksek yoğunluklu lipoprotein kolesterol ve kardiyovasküler hastalık. Dört prospektif Amerikan çalışması. dolaşım. 1989; 79 :8–15. doi: 10.1161/01.CIR.79.1.8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              78. Srinivasan SR, Myers L, Berenson GS. Çocuklarda yüksek yoğunluklu olmayan lipoprotein kolesterolün dağılımı ve korelasyonları: Bogalusa kalp çalışması. pediatri 2002; 110 :e29. doi: 10.1542/peds.110.3.e29. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              79. Hoenig MR. Lipid düşürücü tedavi için obezite salgınının etkileri: HDL olmayan kolesterol, birincil terapötik hedef olarak LDL kolesterolün yerini almalıdır. Vasc Sağlık Risk Yönetimi 2008; 4 :143–156. doi: 10.2147/VHRM.S2364. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              80. Ulusal Kolesterol Eğitim Programı. https://www.nhlbi.nih.gov/files/docs...s/atglance.pdf .
              81. Masson D, Koseki M, Ishibashi M, Larson CJ, Miller SG, King BD, Tall AR. Yeni bir SR-BI inhibitörü ile tedavi edilen insanlarda ve farelerde artmış HDL kolesterol ve apoA-I. Arterioskler Tromb Vasc Biol. 2009; 29 :2054–2060. doi: 10.1161/ATVBAHA.109.191320. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              82. Beyaz CR, Garber DW, Anantharamaiah GM. Apolipoprotein mimetiklerinin antiinflamatuar ve kolesterol düşürücü özellikleri: Bir gözden geçirme. J Lipid Res. 2014; 55 :2007–2021. doi: 10.1194/jlr.R051367. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              83. Parathasarathy S, Raghavamenon A, Garelnabi MO, Santanam N. Oksitlenmiş düşük yoğunluklu lipoprotein. Yöntemler Mol Biol. 2010; 610 :403–417. doi: 10.1007/978-1-60327-029-8_24. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              84. Besler C, Lüscher TF, Landmesser U. Yüksek yoğunluklu lipoproteinin vasküler etkilerinin moleküler mekanizmaları: Kardiyovasküler hastalıkta değişimler. EMBO Mol Med. 2012; 4 :251–268. doi: 10.1002/emmm.201200224. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              85. Stary HC. Yaşamın ilk kırk yılında koroner arterlerin aterosklerotik lezyonlarında hücre ve matriks dizilimi değişir. Eur Heart J. 1990; 11 (Ek E):S3–S19. doi: 10.1093/eurheartj/11.suppl_E.3. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              86. Sullivan MP, Cerda JJ, Robbins FL, Burgin CW, Beatty RJ. Hiper-lipidemi için kemirgen modelleri olarak gerbil, hamster ve kobay. Lab Animasyon Bilimi 1993; 43 :575–578. [ PubMed ] [ Google Akademik ]
              87. Sima A, Stancu C, Constantinescu E, Ologeanu L, Simionescu M. Hiperlipemik hamster-amlodipinin anti-aterojenik etkisini test etmek için bir model. J Hücre Mol Med. 2001; 5 :153–162. doi: 10.1111/j.1582-4934.2001.tb00148.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              88. Ohmura H, Fukushima Y, Mizuno A, Niwa K, Kobayashi Y, Ebina T, Kimura K, Ishibashi S, Daida H. Japonya Sağlık ve Refah Bakanlığı Primer Hiperlipidemi Araştırma Komitesi: Heterozigot ailesel hiperkolesteroleminin tahmini prevalansı Akut koroner sendromlu hastalarda. Uluslararası Kalp J. 2017; 58 :88–94. doi: 10.1536/ihj.16-188. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              89. Rosenson RS, Brewer HB, Jr, Ansell BJ, Barter P, Chapman MJ, Heinecke JW, Kontush A, Tall AR, Webb NR. Disfonksiyonel HDL ve aterosklerotik kardiyovasküler hastalık. Nat Rev Cardiol. 2016; 13 :48–60. doi: 10.1038/nrcardio.2015.124. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              90. Gistera A, Hansson GK. Aterosklerozun immünolojisi. Nat Rev Nefrol. 2017; 13 :368–380. doi: 10.1038/nrneph.2017.51. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              91. Jonsson AL, Bäckhed F. Aterosklerozda bağırsak mikrobiyotasının rolü. Nat Rev Cardiol. 2017; 14 :79–87. doi: 10.1038/nrcardio.2016.183. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              92. Babicek K, Cehová I, Simon RR, Harwood M, Cox DJ. Sıçanlarda partikül maya (1,3/1,6)-beta-D-glukanın toksikolojik değerlendirmesi. Gıda Kimyasal Toksikol. 2007; 45 :1719–1730. doi: 10.1016/j.fct.2007.03.013. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              93. Brown L, Rosner B, Willett WW, Sacks FM. Diyet lifinin kolesterol düşürücü etkileri: Bir meta-analiz. Ben J Clin Nutr. 1999; 69 :30–42. [ PubMed ] [ Google Akademik ]
              94. Phillips GO, Cui SW. Giriş: Diyet lifinin düzenleyici tanımının gelişimi ve sonuçlandırılması. Gıda Hidrokolloidleri. 2011; 25 :139–143. doi: 10.1016/j.foodhyd.2010.04.011. [ CrossRef ] [ Google Akademik ]
              95. Slavin JL. Diyet lifi ve vücut ağırlığı. Beslenme. 2005; 21 :411, 418. doi: 10.1016/j.nut.2004.08.018. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              96. Cheung PCK. Diyet lifi kaynağı olarak yenilebilir mantarlar üzerine mini inceleme: Hazırlık ve sağlık yararları. Gıda Bilimi İnsan Sağlığı. 2013; 2 :162–166. doi: 10.1016/j.fshw.2013.08.001. [ CrossRef ] [ Google Akademik ]
              97. Jenkins DJ, Kendall CW, Axelsen M, Augustin LS, Vuksan V. Viskoz ve viskoz olmayan lifler, emilmeyen ve düşük glisemik indeksli karbonhidratlar, kan lipitleri ve koroner kalp hastalığı. Curr Opin Lipidol. 2000; 11 :49–56. doi: 10.1097/00041433-200002000-00008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              98. Gee JM, Blackburn NA, Johnson IT. Guar sakızının sıçanda bağırsak kolesterol taşınması üzerindeki etkisi. Br J Nutr. 1983; 50 :215–224. doi: 10.1079/BJN19830091. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              99. Chau CF, Huang YL. Passiflora edulis tohumundan elde edilen çözünmeyen lifin plazma ve hepatik lipidler ve dışkı çıkışı üzerindeki etkileri. Mol Nutr Gıda Arş. 2005; 49 :786–790. doi: 10.1002/mnfr.200500060. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              100. Cho IJ, Lee C, Ha TY. Cassia tora Linn tohumlarından izole edilen çözünür lifin hipolipidemik etkisi. Yüksek kolesterol diyetiyle beslenen sıçanlarda. J Tarım Gıda Kimyası 2007; 55 :1592–1596. doi: 10.1021/jf0622127. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              101. Zacherl C, Eisner P, Engel KH. Sindirilmiş suda çözünür ve çözünmez diyet liflerinin viskozitesini ve safra asidi bağlama kapasitesini ilişkilendirmek için in vitro model. Gıda Kimyası 2011; 126 :423–428. doi: 10.1016/j.foodchem.2010.10.113. [ CrossRef ] [ Google Akademik ]
              102. Aoki S, Iwai A, Kawata K, Muramatsu D, Uchiyama H, Okabe M, Ikesue M, Maeda N, Uede T. Aureobasidium pullulans-türetilmiş β-glukanın oral uygulaması, yüksek yağlı diyet kaynaklı gelişimi etkili bir şekilde önler farelerde yağlı karaciğer. Sci Rep. 2015; 5 :10457. doi: 10.1038/srep10457. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              103. Steinberg GR, Kemp BE. Sağlıkta ve hastalıkta AMPK. Physiol Rev. 2009; 89 :1025–1078. doi: 10.1152/physrev.00011.2008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              104. Kaczmarczyk MM, Miller MJ, Freund GG. Diyet lifinin sağlığa faydaları: Tip 2 diabetes mellitus, kardiyovasküler hastalık ve kolon kanseri gibi olağan şüphelilerin ötesinde. Metabolizma. 2012; 61 :1058–1066. doi: 10.1016/j.metabol.2012.01.017. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              105. Drew BG, Fidge NH, Gallon-Beaumier G, Kemp BE, Kingwell BA. Yüksek yoğunluklu lipoprotein ve apolipoprotein AI, protein birleşmesi ve çok bölgeli fosforilasyon yoluyla endotelyal NO sentaz aktivitesini arttırır. Proc Natl Acad Sci USA. 2004; 101 :6999–7004. doi: 10.1073/pnas.0306266101. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              106. Roy CC, Kien CL, Bouthillier L, Levy E. Kısa zincirli yağ asitleri: Prime time için hazır. Beslenme Kliniği Uygulaması. 2006; 21 :351–366. doi: 10.1177/0115426506021004351. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              107. den Besten G, van Eunen K, Groen AK, Venema K, Reijngoud DJ, Bakker BM. Kısa zincirli yağ asitlerinin diyet, bağırsak mikrobiyotası ve konakçı enerji metabolizması arasındaki etkileşimdeki rolü. J Lipid Res. 2013; 54 :2325–2340. doi: 10.1194/jlr.R036012. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              108. Chan GC, Chan WK, Sze DM. Beta-glukanın insan bağışıklık ve kanser hücreleri üzerindeki etkileri. J Hematol Onkol. 2009; 2:25 . doi: 10.1186/1756-8722-2-25. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              109. Al-Lahham SH, Peppelenbosch MP, Roelofsen H, Vonk RJ, Venema K. İnsanlarda propionik asidin biyolojik etkileri; metabolizma, potansiyel uygulamalar ve altta yatan mekanizmalar. Biochim Biophys Açta. 2010; 1801 :1175–1183. doi: 10.1016/j.bbalip.2010.07.007. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              110. Wismar R, Brix S, Frøkiaer H, Laerke HN. Sağlık ve hastalıkta immün düzenleyici bileşikler olarak diyet lifleri. Ann NY Acad Sci. 2010; 1190 :70–85. doi: 10.1111/j.1749-6632.2009.05256.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              111. Vangaveti V, Shashidhar V, Jarrod G, Baune BT, Kennedy RL. Serbest yağ asidi reseptörleri: Diyabet ve komplikasyonlarının tedavisi için ortaya çıkan hedefler. Adv Endocrinol Metab. 2010; 1 :165–175. doi: 10.1177/2042018810381066. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              112. Warnberg J, Gomez-Martinez S, Romeo J, Diaz LE, Marcos A. Beslenme, iltihaplanma ve bilişsel işlev. Ann NY Acad Sci. 2009; 1153 :164–175. doi: 10.1111/j.1749-6632.2008.03985.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              113. Cosola C, De Angelis M, Rocchetti MT, Montemurno E, Maranzano V, Dalfino G, Manno C, Zito A, Gesualdo M, Ciccone MM, et al. Beta-glukan takviyesi, sağlıklı bireylerde P-Kresil sülfat seviyelerinde azalma ve gelişmiş endotelyal vasküler reaktivite ile ilişkilidir. PLoS Bir. 2017; 12 :e0169635. doi: 10.1371/journal.pone.0169635. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              114. Mansbach CM, II, Gorelick F. Bağırsak lipid emiliminin gelişimi ve fizyolojik düzenlenmesi. II. Diyet lipid emilimi, karmaşık lipid sentezi ve şilomikronların hücre içi paketlenmesi ve salgılanması. Am J Physiol Gastrointest Liver Physiol. 2007; 293 :G645–G650. doi: 10.1152/ajpgi.00299.2007. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              115. Siyah DD. Bağırsak lipit emiliminin gelişimi ve fizyolojik düzenlenmesi. I. Bağırsak lipid emiliminin gelişimi: şilomikron oluşumunda ve salgılanmasında hücresel olaylar. Am J Physiol Gastrointest Liver Physiol. 2007; 293 :G519–G524. doi: 10.1152/ajpgi.00189.2007. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              116. Kahverengi MS, Goldstein JL. SREBP yolu: Zara bağlı bir transkripsiyon faktörünün proteoliziyle kolesterol metabolizmasının düzenlenmesi. Hücre. 1997; 89 :331–340. doi: 10.1016/S0092-8674(00)80213-5. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              117. Sato R. Sterol metabolizması ve SREBP aktivasyonu. Arch Biochem Biyofiz. 2010; 501 :177–181. doi: 10.1016/j.abb.2010.06.004. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              118. Drozdowski LA, Reimer RA, Temelli F, Bell RC, Vasanthan T, Thomson AB. Beta-glukan özleri, uzun zincirli yağ asitlerinin ve kolesterolün in vitro bağırsak alımını inhibe eder ve sıçanlarda lipogenez ve lipid taşınmasında yer alan genleri aşağı doğru düzenler. J Nutr Biochem. 2010; 21 :695–701. doi: 10.1016/j.jnutbio.2009.04.003. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              119. Chen J, Huang XF. Beta-glukanlarla zenginleştirilmiş diyetlerin kan lipoprotein konsantrasyonları üzerindeki etkileri. J Clin Lipidol. 2009; 3 :154–158. doi: 10.1016/j.jacl.2009.04.054. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              120. Rondanelli M, Opizzi A, Monteferrario F, Klersy C, Cazzola R, Cestaro B. Beta-glukan- veya pirinç kepeği ile zenginleştirilmiş gıdalar: Hafif hiperkolesterolemik erkeklerde lipidik patern üzerine karşılaştırmalı bir çapraz klinik çalışma. Eur J Clin Nutr. 2011; 65 :864–871. doi: 10.1038/ejcn.2011.48. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              121. Wolever TM, Tosh SM, Gibbs AL, Brand-Miller J, Duncan AM, Hart V, Lamarche B, Thomson BA, Duss R, Wood PJ. Yulaf β-glukanın fizikokimyasal özellikleri, insanlarda serum LDL kolesterolü düşürme yeteneğini etkiler: Randomize bir klinik çalışma. Ben J Clin Nutr. 2010; 92 :723–732. doi: 10.3945/ajcn.2010.29174. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              122. Johnson IT, Gee JM. Jel oluşturucu sakızların bağırsaktaki karıştırılmamış tabaka ve in vitro şeker taşınması üzerindeki etkisi. Bağırsak. 1981; 22 :398–403. doi: 10.1136/gut.22.5.398. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              123. Kirby RW, Anderson JW, Sieling B, Rees ED, Chen WJ, Miller RE, Kay RM. Yulaf kepeği alımı, hiperkolesterolemik erkeklerin serum düşük yoğunluklu lipoprotein kolesterol konsantrasyonlarını seçici olarak düşürür. Ben J Clin Nutr. 1981; 34 :824–829. [ PubMed ] [ Google Akademik ]
              124. Fadel JG, Newman RK, Newman CW, Barnes AE. Etlik civcivlere verilen farklı arpa diyetlerindeki beta-glukanların hipokolesterolemik etkileri. Nutr Rep Int. 1987; 35 :1049–1058. [ Google Akademik ]
              125. Li J, Kaneko T, Qin LQ, Wang J, Wang Y, Sato A. GK farelerinde yüksek diyet lifi alımının glikoz toleransı ve lipid metabolizması üzerindeki uzun vadeli etkileri: Arpa, pirinç ve mısır nişastası arasında karşılaştırma. Metabolizma. 2003; 52 :1206–1210. doi: 10.1016/S0026-0495(03)00159-8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              126. Sima A, Bulla A, Simionescu N. Hiperlipidemik hamsterde deneysel obstrüktif koroner ateroskleroz. J Submicrosc Cytol Pathol. 1990; 22 :1–16. [ PubMed ] [ Google Akademik ]
              127. Lim MK, Ku SK, Choi JS, Kim JW. Aureobasidium kaynaklı bir β-glukan olan polycan'ın yüksek yağlı diyete bağlı hiperlipemik bir hamster modeli üzerindeki etkisi. Exp Ther Med. 2015; 9 :1369–1378. doi: 10.3892/etm.2015.2238. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              128. Delaney B, Nicolosi RJ, Wilson TA, Carlson T, Frazer S, Zheng GH, Hess R, Ostergren K, Haworth J, Knutson N. Arpa ve yulaftan alınan beta-glukan fraksiyonları benzer şekilde hiperkolesterolemik Suriye altın hamsterlarında anti-aterojeniktir. . J Nutr. 2003; 133 :468–475. doi: 10.1093/jn/133.2.468. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              129. Wilson TA, Nicolosi RJ, Delaney B, Chadwell K, Moolchandani V, Kotyla T, Ponduru S, Zheng GH, Hess R, Knutson N, et al. Azaltılmış ve yüksek moleküler ağırlıklı arpa beta-glukanları, hiperkolesterolemik Suriye altın hamsterlarında plazma toplamını ve HDL olmayan kolesterolü azaltır. J Nutr. 2004; 134 :2617–2622. doi: 10.1093/jn/134.10.2617. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              130. Wu YS, Ho SY, Nan FH, Chen SN. Yüksek kolesterol diyetinin neden olduğu iltihaplanmada bir immünomodülatör olarak Ganoderma lucidum beta 1,3/1,6 glukan. BMC Tamamlayıcı Altern Med. 2016; 16 :500. doi: 10.1186/s12906-016-1476-3. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              131. Kusmiati, Dhewantara FX. Sıçanlarda Saccharomyces cerevisiae'den ekstrakte edilen beta glukanın kolesterol düşürücü etkisi. Bilim Ecz. 2016; 84 :153–165. doi: 10.3797/scipharm.ISP.2015.07. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              132. Tong LT, Zhong K, Liu L, Zhou X, Qiu J, Zhou S. Diyetle alınan kabuğuz arpa β-glukanın hiperkolesterolemik hamsterlerin kolesterol metabolizması üzerindeki etkileri. Gıda Kimyası 2015; 169 :344–349. doi: 10.1016/j.foodchem.2014.07.157. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              133. Vetvicka V, Vetvickova J. Farklı beta-glukan türlerinin fizyolojik etkileri. Biomed Pap Med Fac Univ Palacky Olomouc Çek Cumhuriyeti. 2007; 151 :225–231. doi: 10.5507/bp.2007.038. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              134. Malkki Y. Yulaf lifi. İçinde: Cho S, Dreher ML, editörler. Gıda Bilimi ve Teknolojisi: Diyet Lifi El Kitabı. M.Deker; New York: 2001. sayfa 497–512. [ Google Akademik ]
              135. Veniant MM, Withycombe S, Young SG. Apoe −/− ve Ldlr −/− farelerinde lipoprotein boyutu ve ateroskleroz duyarlılığı. Arterioskler Tromb Vasc Biol. 2001; 21 :1567–1570. doi: 10.1161/hq1001.097780. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              136. Pendse AA, Arbones-Mainar JM, Johnson LA, Altenburg MK, Maeda N. Apolipoprotein E nakavt ve nakavt fareler: Ateroskleroz, metabolik sendrom ve ötesi. J Lipid Res. 2009; 50 (Ek):S178–S182. doi: 10.1194/jlr.R800070-JLR200. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              137. Anderson JW, Story L, Sieling B, Chen WJ, Petro MS, Story J. Hiperkolesterolemik erkekler için yulaf kepeği veya fasulye alımının hipokolesterolemik etkileri. Ben J Clin Nutr. 1984; 40 :1146–1155. doi: 10.1093/ajcn/40.6.1146. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              138. Anderson JW, Gustafson NJ. Yulaf ve fasulye ürünlerinin hipokolesterolemik etkileri. Ben J Clin Nutr. 1988; 48 (Ek 3):S749–S753. doi: 10.1093/ajcn/48.3.749. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              139. Braaten JT, Wood PJ, Scott FW, Wolynetz MS, Lowe MK, Bradley-White P, Collins MW. Yulaf beta-glukan, hiperkolesterolemik deneklerde kan kolesterol konsantrasyonunu azaltır. Eur J Clin Nutr. 1994; 48 :465–474. [ PubMed ] [ Google Akademik ]
              140. Newman RK, Lewis SE, Newman CW, Boik RJ, Ramage RT. Arpa gıdalarının sağlıklı erkekler üzerindeki hipokolesterolemik etkisi. Nutr Rep Int. 1989; 39 :749–760. [ Google Akademik ]
              141. McIntosh GH, Whyte J, McArthur R, Nestel PJ. Arpa ve buğday gıdaları: Hiperkolesterolemik erkeklerde plazma kolesterol konsantrasyonlarına etkisi. Ben J Clin Nutr. 1991; 53 :1205–1209. doi: 10.1093/ajcn/53.5.1205. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              142. Lupton JR, Robinson MC, Morin JL. Arpa kepeği unu ve yağının kolesterol düşürücü etkisi. J Am Diyet Doç. 1994; 94 :65–70. doi: 10.1016/0002-8223(94)92044-3. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              143. Lia A, Hallmans G, Sandberg AS, Sundberg B, Aman P, Anderson H. Yulaf beta-glukan safra atılımını arttırır ve lif bakımından zengin bir arpa frakton ileostomi deneklerinde kolesterol atılımını arttırır. Ben J Clin Nutr. 1995; 62 :1245–1251. doi: 10.1093/ajcn/62.6.1245. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              144. Bell S, Goldman VM, Bistrian BR, Arnold AH, Ostroff G, Forse RA. Yulaf ve mayadan beta-glukanın serum lipidleri üzerindeki etkisi. Crit Rev Food Sci Nutr. 1999; 39 :189–202. doi: 10.1080/10408399908500493. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              145. Li J, Kaneko T, Qin LQ, Wang J, Wang Y. Arpa alımının kadınlarda glikoz toleransı, lipid metabolizması ve bağırsak işlevi üzerindeki etkileri. Beslenme. 2003; 19 :926–929. doi: 10.1016/S0899-9007(03)00182-5. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              146. Behall KM, Scholfield DJ, Hallfrisch J. Arpa içeren diyetler, hafif hiperkolesterolemik erkek ve kadınlarda lipidleri önemli ölçüde azaltır. Ben J Clin Nutr. 2004; 80 :1185–1193. doi: 10.1093/ajcn/80.5.1185. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              147. Behall KM, Scholfield DJ, Hallfrisch J. Orta derecede hiperkolesterolemik erkeklerde arpa içeren diyetlerle lipidler önemli ölçüde azaldı. J Am Coll Nutr. 2004; 23 :55–62. doi: 10.1080/07315724.2004.10719343. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              148. Keenan JM, Goulson M, Shamliyan T, Knutson N, Kolberg L, Curry L. Hiperkolesterolemik erkek ve kadın popülasyonunda konsantre arpa beta-glukanın kan lipitleri üzerindeki etkileri. Br J Nutr. 2007; 97 :1162–1168. doi: 10.1017/S0007114507682968. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              149. Shimizu C, Kihara M, Aoe S, Araki S, Ito K, Hayashi K, Watari J, Sakata Y, Ikegami S. Japon erkeklerinde yüksek beta-glukanlı arpanın serum kolesterol konsantrasyonları ve visseral yağ alanı üzerindeki etkisi-a randomize , çift kör, plasebo kontrollü çalışma. Bitki Besinleri Hum Nutr. 2008; 63 :21–25. doi: 10.1007/s11130-007-0064-6. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              150. Sundberg B. Bir arpa lifi pul ürününün kolesterol düşürücü etkileri. Agro Gıda Endüstrisi Yüksek Teknoloji. 2008; 19 :14–17. [ Google Akademik ]
              151. Zhu X, Sun X, Wang M, Zhang C, Cao Y, Mo G, Liang J, Zhu S. Hiperkolesterolemik deneklerde beta-glukan tüketiminin serum lipit profili ve glikoz seviyesi üzerindeki etkilerinin nicel değerlendirmesi. Nutr Metab Kardiyovasküler Dis. 2015; 25 :714–723. doi: 10.1016/j.numecd.2015.04.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              152. Keogh GF, Cooper GJ, Mulvey TB, McArdle BH, Coles GD, Monro JA, Poppitt SD. Hafif hiperkolesterolemik erkeklerde yüksek oranda beta-glukanla zenginleştirilmiş arpanın kardiyovasküler hastalık risk faktörleri üzerindeki etkisinin randomize kontrollü çapraz çalışması. Ben J Clin Nutr. 2003; 78 :711–718. doi: 10.1093/ajcn/78.4.711. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              153. Biörklund M, van Rees A, Mensink RP, Onning G. Yulaf veya arpadan elde edilen beta-glukan içeren içeceklerin tüketiminden sonra serum lipidlerinde ve postprandial glikoz ve insülin konsantrasyonlarındaki değişiklikler: Randomize doz kontrollü bir çalışma. Eur J Clin Nutr 5. 2005; 9 :1272–1281. doi: 10.1038/sj.ejcn.1602240. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              154. Ibrügger S, Kristensen M, Poulsen MW, Mikkelsen MS, Ejsing J, Jespersen BM, Dragsted LO, Engelsen SB, Bügel S. Yulaf ve arpadan çıkarılan β-glukanlar sağlıklı genç yetişkinlerde kolesterol metabolizmasını etkilemez. J Nutr. 2013; 143 :1579–1585. doi: 10.3945/jn.112.173054. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              155. Talati R, Baker WL, Pabilonia MS, White CM, Coleman CI. Arpadan türetilen çözünür lifin serum lipidleri üzerindeki etkileri. Ann Fam Med. 2009; 7 :157–163. doi: 10.1370/afm.917. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              156. AbuMweis SS, Jew S, Ames NP. Arpadan elde edilen β-glukan ve lipit düşürme kapasitesi: Randomize, kontrollü çalışmaların bir meta-analizi. Eur J Clin Nutr. 2010; 64 :1472–1480. doi: 10.1038/ejcn.2010.178. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              157. Anderson TJ, Grégoire J, Hegele RA, Couture P, Mancini GB, McPherson R, Francis GA, Poirier P, Lau DC, Grover S, et al. Yetişkinlerde kardiyovasküler hastalığın önlenmesi için dislipideminin tanı ve tedavisine yönelik Kanada Kardiyovasküler Derneği kılavuzlarının 2012 güncellemesi. Can J Cardiol. 2013; 29 :151–167. doi: 10.1016/j.cjca.2012.11.032. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              158. Newman RK, Newman CW. Genetik ve Besin Bileşimi. John Wiley ve Oğulları; Hoboken, NJ: 2008. Gıda ve sağlık için arpa: Bilim, teknoloji ve ürünler; s. 56–94. [ Google Akademik ]
              159. Ho HV, Sievenpiper JL, Zurbau A, Blanco Mejia S, Jovanovski E, Au-Yeung F, Jenkins AL, Vuksan V. Arpa β-glukanın LDL üzerindeki etkisine ilişkin randomize kontrollü çalışmaların sistematik bir incelemesi ve meta-analizi Kardiyovasküler hastalık riskinin azaltılması için -C, non-HDL-C ve apoBi-iv. Eur J Clin Nutr. 2016; 70 :1340. doi: 10.1038/ejcn.2016.129. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              160. Mori K, Kobayashi C, Tomita T, Inatomi S, Ikeda M. Yenilebilir mantarlar Pleurotus eryngii (Eringi), Grifola frondosa (Maitake) ve Hypsizygus marmoreus'un (Bunashimeji) apolipoprotein E eksikliği olan farelerde antiaterosklerotik etkisi. Nutr Arş. 2008; 28 :335–342. doi: 10.1016/j.nutres.2008.03.010. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              161. Sun JE, Ao ZH, Lu ZM, Xu HY, Zhang XM, Dou WF, Xu ZH. Batık kültürde Inonotus obliquus kültür sıvısının kuru maddesinin normal ve alloksan-diyabetli fareler üzerindeki antihiperglisemik ve antilipidperoksidatif etkileri. J Etnofarmakol. 2008; 118 :7–13. doi: 10.1016/j.jep.2008.02.030. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              162. Bays HE, Evans JL, Maki KC, Evans M, Maquet V, Cooper R, Anderson JW. Kitin-glukan lifinin oksitlenmiş düşük yoğunluklu lipoprotein üzerindeki etkileri: Randomize kontrollü bir çalışma. Eur J Clin Nutr. 2013; 67 :2–7. doi: 10.1038/ejcn.2012.121. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
              163. Serra-Majem L, Roman B, Estruch R. Akdeniz diyetini kullanan müdahalelerin bilimsel kanıtı: Sistematik bir derleme. Beslenme Rev. 2006; 64 (Ek):S27–S47. doi: 10.1111/j.1753-4887.2006.tb00232.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
              164. Wang Y, Harding SV, Eck P, Thandapilly SJ, Gamel TH, Abdel-Aal el-SM, Crow GH, Tosh SM, Jones PJ, Ames NP. Yüksek moleküler ağırlıklı β-glukan, hafif hiperkolesterolemik yetişkinlerde CYP7A1 rs3808607 polimorfizmine dayalı olarak serum kolesterolünü farklı şekilde azaltır. J Nutr. 2016; 146 :720–727. doi: 10.3945/jn.115.223206. [ PubMed ] [ CrossRef ] [ Google Scholar ]

              Yorum yap


              • #8
                Soğuk Algınlığı Nedir ? Beta Glukan Faydaları Nelerdir ?

                Yoğun Bakım Ünitesine Başvuran Ağır COVID-19 Hastalarında İnvaziv Akciğer Mantar Enfeksiyonlarının Oluşumu

                Arnaud Fekkar , 1, 2 Alexandre Lampros , 1 Julien Mayaux , 3 Corentin Poignon , 1 Sophie Demeret , 4 Jean-Michel Constantin , 5 Anne-Geneviève Marcelin , 6 Antoine Monsel , 7, 8, 9 Charles-Edouard Luyt , 10, 11 ve Marion Blaize 1
                Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                Cilt 203, sayfa 275'teki " İnvaziv Pulmoner Aspergilloz Tekrar Viral Olur mu? " bölümüne bakın.
                Git: Soyut


                Gerekçe: Şiddetli koronavirüs hastalığının (COVID-19) invaziv mantar süperenfeksiyonlarının gelişimi için önemli bir risk faktörü olup olmadığı tıbbi açıdan büyük ilgi görmektedir ve şimdilik açık bir soru olarak kalmaktadır.

                Amaç: Şiddetli COVID-19 hastalarında invaziv fungal solunum yolu süperenfeksiyonlarının oluşumunu değerlendirmeyi amaçlıyoruz.

                Yöntemler: Çalışmayı, Fransa'da beş yoğun bakım ünitesine başvuran ve mantar komplikasyonlarının spesifik taraması için solunum ve serum örneklemesi yapılan ciddi akut solunum sendromu koronavirüs 2 (SARS-CoV-2) ile ilişkili pnömonili hastalar üzerinde gerçekleştirdik.

                Ölçümler ve Ana Bulgular: Çalışma popülasyonu toplam 145 hastayı içermiştir; medyan yaş 55 idi. Çoğu erkekti ( n  = 104; %72), fazla kiloluydu ( n  = 99; %68), hipertansiyonu ( n  = 83; %57) ve diyabeti ( n  = 46; %32) vardı. Az sayıda hasta, invazif mantar enfeksiyonu için önceden var olan konakçı risk faktörlerine sahipti ( n  = 20; %14). Küresel şiddetleri yüksekti; tüm hastalar invaziv mekanik ventilasyondaydı ve yarısı ( n = 73, %54 ekstrakorporeal membran oksijenasyon desteği alıyordu. Mikolojik analiz, 475 solunum örneği ve 532 serum üzerinde gerçekleştirilen 2.815 mikolojik testi (kültür, galaktomannan, β-glukan ve PCR) içermektedir. 7 (%4,8) hastada olası/varsayılan invaziv bir pulmoner küf enfeksiyonu teşhis edildi ve yüksek mortalite ile ilişkilendirildi. Çok değişkenli analiz, katı organ nakli alıcıları için önemli ölçüde daha yüksek bir risk olduğunu gösterir (olasılık oranı, = 4,66; çeyrekler arası aralık, 1,98–7,34; P  = 0,004). 25 hastada (%17,2) yanlış pozitif mantar testi ve antifungal tedavi başlanmasını gerektirmeyen klinik olarak alakasız kolonizasyon gözlendi.

                Sonuçlar: Altta immünsüpresyonu olmayan hastalarda, şiddetli SARS-CoV-2 ile ilişkili pnömoni, özellikle aspergilloz olmak üzere invaziv fungal sekonder enfeksiyon riski düşük görünmektedir.

                Anahtar Kelimeler: mantar enfeksiyonu, aspergilloz, COVID-19, SARS-CoV-2, aspergillus

                Bir Bakışta Açıklama

                Konuyla İlgili Bilimsel Bilgi


                Koronavirüs hastalığının (COVID-19) invaziv fungal süperenfeksiyonların gelişimi için önemli bir risk faktörü olup olmadığı, tıbbi açıdan büyük ilgi gören açık bir soru olmaya devam etmektedir. PubMed veri tabanında 19 Ekim 2020 tarihine kadar yayınlanan makaleleri “COVID-19” VE “Aspergilloz” VEYA “ Aspergillus ” anahtar kelimelerini kullanarak aradık . Mevcut en alakalı olaylar, kısa seriler ve aspergillozla ilgili iki prospektif çalışmaydı ve neredeyse tamamı endişe verici bir invaziv aspergilloz insidansı olduğunu iddia ediyordu (%19.4-35). Aspergilloz insidansının düşük olduğu başka bir seri de bulduk.

                Bu Çalışma Alana Ne Katıyor?


                Mantar süperenfeksiyonları için özel bir araştırma yapılmış, ciddi akut solunum sendromu koronavirüs 2 (SARS-CoV-2) ile ilişkili pnömonisi olan 145 kritik hasta hasta kohortunu sunuyoruz. Yedi hastada invaziv bir pulmoner mantar enfeksiyonu teşhis edildi ve bu insidans %4.8'e ulaştı. Çok değişkenli analiz, katı organ nakli alıcılarının özellikle invaziv aspergilloz geliştirme riski altında göründüğünü gösterir. Daha önce bildirilenlerin aksine, şiddetli COVID-19 nedeniyle yoğun bakım ünitesine kabul edilen bağışıklığı yeterli hastalarda invaziv mantar komplikasyonları riskinin düşük olduğunu gösteren ilgili veriler sağlıyoruz. Bu hastalarda kontaminasyon/klinik olarak ilgisiz kolonizasyon sıktır (serimizde %17.2) ve antifungal tedavinin başlamasına yol açmamalıdır.

                Şiddetli akut solunum sendromu koronavirüs 2 (SARS-CoV-2) ile enfekte hastaların yaklaşık %5'i viral replikasyon, ardından gelen sitokin fırtınası ve karmaşık inflamatuar süreçler nedeniyle ciddi akciğer hasarı yaşar (1 ) . Bu, hastalığın başlangıcından hemen sonra ikincil enfeksiyonlara yol açabilir ( 2 ).

                Şiddetli SARS-CoV-2 enfeksiyonu formları (koronavirüs hastalığı [COVID-19]) geliştiren hastaların çoğu, obezite, hipertansiyon, diyabet ve kronik kalp veya böbrek hastalığı gibi altta yatan kronik durumlarla başvuran bağışıklığı yeterli kişilerdir (3 ) . Bu faktörlerin hiçbiri genellikle invaziv pulmoner mantar enfeksiyonları geliştirme riskinin artmasıyla ilişkili değildir. Bunların tümü, neredeyse yalnızca iyi tanımlanmış kalıtsal veya edinilmiş immünsupresyon faktörleri olan hastalarda ortaya çıkar. Bunlar, nötropeni, yüksek doz ve uzun süreli kortikosteroid tedavisi, katı organ nakli (SOT), hematolojik maligniteler, kanser veya tedavi edilmemiş HIV enfeksiyonu gibi farklı klinik durumları kapsar.

                SARS-CoV (2002-2003'teki şiddetli akut solunum sendromu salgınından sorumlu) veya Orta Doğu solunum sendromu koronavirüsü nedeniyle ortaya çıkan koronavirüs salgınlarına ilişkin önceki veriler de, bağışıklığı baskılanmış hastaların, diğer hastalara kıyasla daha yüksek ciddi akciğer hastalığı riski taşımadığını göstermektedir. genel nüfus ( 4 , 5 ). Bununla birlikte, artmış bir risk olmasa bile SARS-CoV-2, özellikle mantar komplikasyonlarına maruz kalanlar da dahil olmak üzere bağışıklığı baskılanmış hastaları hala enfekte edebilir.

                Daha da önemlisi, invaziv aspergilloz, ciddi viral ilişkili pnömoninin bir komplikasyonu olarak iyi tanımlanmıştır ( 6 – 8 ). Çok merkezli retrospektif bir çalışma, influenza ile ilişkili akut solunum yetmezliği nedeniyle yoğun bakım ünitesine kabul edilen 432 hasta arasında invaziv aspergilloz insidansının %19'a ulaştığını bildirmiştir (7 ) . Ek olarak, 2003 yılında SARS'tan ölen hastaların bir otopsi serisinde, %10'unda (2/20) aspergillozu düşündüren invaziv bir enfeksiyon vardı ( 6 ). Son olarak, biz de dahil olmak üzere farklı yazarlar, yakın zamanda şiddetli COVID-19'lu immün yetmezlikli kritik hastalarda vaka raporları ve küçük invaziv aspergilloz serileri bildirdiler ( 9 – 14 )). Çoğunlukla yüksek invaziv aspergilloz insidansını bildiren bu ilk sonuçlara paralel olarak, Bartoletti ve meslektaşları ve White ve meslektaşları daha yakın zamanda prospektif çalışmalar ortamında yüksek bir aspergilloz insidansı bildirdiler (15 , 16 ) . Tersine, Lamoth ve meslektaşları, mekanik ventilasyon altında şiddetli COVID-19'u olan 80 hastadan oluşan bir kohortta düşük insidans bildirdiler ( 17 ).

                Tıp camiası bu salgınla karşı karşıya olduğundan, SARS-CoV-2 ile enfekte hastaların, özellikle küf enfeksiyonları (esas olarak aspergilloz) ve pnömosistoz. Şiddetli COVID-19'lu hastalarda mekanik ventilasyonla ilişkili pnömoniden şüphelenildiğinde, bir mantar ajanı araştırması yapıldı. Bu nedenle, şiddetli COVID-19 ile ilişkili pnömoni için yoğun bakıma başvuran hastalarda invaziv pulmoner mantar enfeksiyonlarının (IFI'ler) ve klinik olmayan ilgili kolonizasyonun oluşumunu değerlendirmeyi amaçlayan bir çalışmanın sonuçlarını sunuyoruz.

                Bu çalışmanın sonuçlarından bazıları daha önce kısaca rapor edilmiş veya vaka raporu ( 10 , 18 ) veya mektup ( 19 , 20 ) şeklinde tartışılmıştır .

                Git: Yöntemler

                Tasarım ve Hastalar


                Fransa, Paris'te 1.850 yataklı üçüncü basamak bir bakım merkezi olan La Pitié-Salpêtrière hastanesi olan tek bir merkezden beş bağımsız yoğun bakım ünitesinde bir analiz gerçekleştirdik. Bu hastane, salgına sıhhi müdahalenin koordinasyonu ve SARS-CoV-2 ile enfekte hastaların yönetimi için Paris bölgesindeki iki referans merkezinden (Fransa'da dokuz merkez) biridir. Çalışma döneminde hastanenin organizasyonu derinden değiştirildi ve 125 yoğun bakım yatağı konuşlandırıldı ve yalnızca şiddetli COVID-19 hastalarının bakımına tahsis edildi. Yoğun bakım ünitelerimize kabul edilen ve invaziv mantar enfeksiyonları için test edilen SARS-CoV-2 enfeksiyonunun doğrulanmış moleküler tanısı olan tüm hastalar dahil edildi. Mantar enfeksiyonlarının aranması, solunum ve/veya serum numunesi analizine dayanıyordu, Vaka Tanımı


                Aspergilloz ve buna bağlı olarak diğer küf enfeksiyonları için, altta yatan immünosupresif durumları olan hastalar için Avrupa Kanser Araştırma ve Tedavi Örgütü (EORTC)/Mikoz Çalışma Grubu (MSG) kriterleri kullanıldı (21 ) . Altta immünosüpresif faktör bulunmayan hastalar, varsayılan invaziv pulmoner küf enfeksiyonu (IPMI) veya yanlış pozitif/klinik olarak alakasız kolonizasyona sahip olarak sınıflandırıldı. Bir veya daha fazla mikolojik test sonucu olan tüm hastalar (kültür, galaktomannan, AspergillusPCR veya β-D-glukan) potansiyel vakalar olarak analiz edildi. Aşağıdaki durumlarda yanlış pozitif/klinik olarak ilgisiz kolonizasyon olarak kabul edildiler: pozitif antijen testi veya daha fazla negatif kontrol ile PCR ve/veya klinik bozulma veya altta yatan immünosupresif durum olmaksızın daha fazla negatif numune ile solunum numunelerinde küf kültürü. Ayrıca, spesifik antifungal tedavi olmamasına rağmen olumlu sonuçları olan hastalarda invaziv enfeksiyon tanısı atıldı.

                Mikolojik Analiz


                Solunum örnekleri, gümüş boyama ve Giemsa renklendirmesinden sonra sitospin ve direkt mikroskobik incelemeye tabi tutuldu. Hepsi kromojenik agar (Chromagar; BioRad), Sabouraud dekstroz agar (sikloheksimid içeren ve içermeyen) ve Malt agar üzerinde kültüre alındı ​​ve 7 gün 37°C'de, ardından 21 gün 25°C'de inkübe edildi. Mantar ajanlarının tanımlanması, kütle spektrometresi (Bruker Microflex ve Kütle Spektrometrisi Tanımlama Veritabanı) ile sağlandı. PCR


                Aspergillus fumigatus , Pneumocystis jirovecii ve Mucorales DNA'sını aramak için 7500 Hızlı Gerçek Zamanlı PCR Sisteminde (Uygulamalı Biyosistemler) gerçek zamanlı PCR gerçekleştirdik . 1 ml solunum numunesi veya serum üzerinde DNA ekstraksiyonu yapıldı. Tüm PCR deneyleri iki kopya halinde gerçekleştirildi ve tek bir pozitif kuyu, pozitif bir sonuç olarak kabul edildi. A. fumigatus PCR testi, daha önce açıklandığı gibi ( 22 ) bir 28S ribozomal RNA kodlayan DNA'nın türe özgü 67-bp'lik bir bölümünü hedefler . P. jirovecii PCR testi, mitokondri1 büyük alt birim ribozomal RNA genini hedefler ( 23 ). Mucorales PCR daha önce yayınlanmış verilerden uyarlanmıştır (24 ) ve dört cins arasından birkaç türü hedef aldı.

                Mantar Antijen Testi


                Galaktomannan (GM) indeksi, üreticinin tavsiyelerine göre enzim immunoassay (BioRad) ile belirlendi. Hem serum için 0,5'e eşit veya daha büyük bir indeks hem de solunum numuneleri için 1'e eşit veya daha büyük bir indeks gösteren iki belirlemeden (aynı numune üzerinde iki farklı tahlil üzerinde gerçekleştirilen) sonra bir sonuç pozitif kabul edildi. β- d -glukan araştırması, üreticinin önerileri izlenerek iki kopya halinde Fungitell testi (Associates of Cape Cod) kullanılarak serumda gerçekleştirilmiştir. Pozitif bir sonuç, 80 pg/ml'lik bir kesme noktasının üzerinde iki ardışık test olarak tanımlandı.

                İstatistiksel analiz


                İstatistiksel analizler, GraphPad Prism 5 ve R sürüm 3.5.3 istatistik yazılımı (R Foundation for Statistical Computing) kullanılarak yapıldı.

                Sürekli ve kategorik değişkenler sırasıyla medyan (çeyrekler arası aralık [IQR]) veya ortalama (SD) ve sayı (yüzde) olarak sunulur. Kategorik değişkenler Fisher kesin testi ve Mann-Whitney U kullanılarak karşılaştırıldı.sürekli değişkenler için test kullanıldı. Hayatta kalma dağılımları, log-rank (Mantel-Cox) testi kullanılarak karşılaştırıldı. İnvaziv pulmoner mantar enfeksiyonu oluşumuyla ilişkili risk faktörlerini araştırmak için tek değişkenli ve çok değişkenli lojistik regresyon modelleri kullanıldı. Çok değişkenli analiz için seçilen değişkenler ilk önce invaziv mantar enfeksiyonu (kortikosteroid tedavisi, SOT ve hematolojik maligniteler) veya mantar kolonizasyonu (kronik obstrüktif akciğer hastalığı [KOAH] ve ekstrakorporeal membran oksijenasyonu [ECMO]) riski verdiği bilinenler ve bunlar tek değişkenli analizde bir eğilim gözlendi. Verileri eksik olan hastalar analiz dışı bırakıldı. 0.05'ten küçük iki taraflı bir α, istatistiksel olarak anlamlı kabul edildi.

                Git: Sonuçlar

                Hasta Özellikleri


                6 Mart 2020 ile 24 Nisan 2020 arasında, ağır COVID-19 nedeniyle yoğun bakım ünitesine toplam 260 hasta kabul edildi. Medyan yatış süresi 30 gündü (IQR, 15–50 gün; ortalama, 36.8 gün). Bu hastalardan 145'i mantar süperenfeksiyonları için özel olarak tarandı (tablo 1). Ağırlıklı olarak erkekti ( n  = 104; %72) ve medyan yaşları 55'ti (IQR, 48-64 yıl). Hipertansiyon ile başvuran hastaların çoğu ( n  = 83; %57), aşırı kilolu/obezite ( n  = 99; %68), diabetes mellitus ( n  = 46; %32), aktif sigara içicisiydi ( n  = 11; %8) ) ve KOAH'ı vardı ( n  = 9; %6). Tablo 1.


                Çalışma Popülasyonunun Özellikleri
                Demografik özellikler ve altta yatan koşullar Yaş, medyan (çeyrekler arası aralık), yıl
                55 (48–64)
                Cinsiyet, E, sayı (%)
                104 (72)
                Aktif sigara içen, n (%)
                11 (8)
                Hipertansiyon, n (%)
                83 (57)
                Kolesterol, n (%)
                32 (22)
                Diyabet, n (%)
                46 (32)
                Fazla kilolu (vücut kitle indeksi > 25 kg/m 2 ), n (%)
                99 (68)
                Kronik obstrüktif akciğer hastalığı, n (%)
                9 (6)
                İnvaziv mantar enfeksiyonu için önceden var olan risk faktörleri ( n  = 26/143) Ana bilgisayar faktörü, n (%) *
                20 (14)
                 hemopati
                3 (2)
                 Hematopoietik kök hücre allogrefti
                1 (0,7)
                 Katı organ nakli
                14 (10)
                 Kortikosteroid tedavisi >0,3 mg/kg
                4 (3)
                HIV enfeksiyonu, n (%)
                6 (4)
                Spesifik COVID-19 tedavisi ( n  = 88/137) HCQ, n (%) HCQ 57 (42)
                HCQ/AZT 9 (7)
                Antiviral, sayı (%) Lopinavir/ritonavir 23 (17)
                remdesivir 4 (3)
                Lopinavir/ritonavir ve remdesivir 4 (3)
                Anti–IL-6, n (%) Tosilizumab 6 (4)
                sarılumab 3 (2)
                Anti–IL-1, n (%)
                1 (0,7)
                COVID-19 ve/veya yoğun bakımda kalışla ilişkili kortikosteroid tedavisi ( n  = 23/132) Yoğun bakıma yatış öncesi, n (%)
                2 (1.5)
                Yoğun bakımda kalış süresi, n (%)
                22 (16.7)
                YBÜ yönetimi ve klinik özellikler; medyan [çeyrekler arası] ICU stay (n = 134), median (interquartile range), d
                30 (15–50)
                SAPS II score (n = 109), median (interquartile range)
                47 (33–62)
                Intubation period (n = 129), median (interquartile range), d
                27 (14–45)
                Worst P/F (n = 135), median (interquartile range)
                60 (51–73)
                Extracorporeal membrane oxygenation (n = 135), n (%)
                73 (54)
                Vasopressor support (>1 mg/h of noradrenalin), n (%)
                94 (70)
                Corticosteroid substitution (hydrocortisone succinate), n (%)
                21 (16)
                Renal replacement therapy, n (%)
                41 (31)
                Inflammatory markers; median [interquartile] Nötrofil lenfosit oranı ( n  = 140), medyan (çeyrekler arası aralık)
                11 (8–17)
                C-reaktif protein ( n  = 109), medyan (çeyrekler arası aralık), mg/L
                216 (130–304)
                Ferritin ( n  = 119), medyan (çeyrekler arası aralık), mg/L
                2.005 (963–3.554)
                IL-6 ( n  = 39), medyan (çeyrekler arası aralık), pg/ml
                248 (87–718)
                Yoğun bakıma yatıştan sonra d 30'da genel sağkalım, n (%) 108 (74,5)
                Ayrı bir pencerede aç
                Kısaltmaların tanımı : AZT = azitromisin; COVID-19 = koronavirüs hastalığı; HCQ = hidroksiklorokin; P /F = PaO2 / F ben02 ; SAPS = Basitleştirilmiş Akut Fizyoloji Puanı.

                * Donnelly ve meslektaşlarına göre Avrupa Kanser Araştırma ve Tedavisi ve Mikoz Çalışma Grubu Örgütü tarafından ortaklaşa tanımlandığı şekliyle ( 21 ).
                Bilgilerin mevcut olduğu 143 hastadan 20'si (%14) bağışıklığı baskılanmış durumdaydı ve EORTC/MSG tarafından birleşik olarak tanımlandığı gibi IFI için risk faktörleri sunuyordu ( 21 ). Ana risk faktörü kortikosteroid ve immünsüpresif ilaç uygulamasıydı, 14 hasta SOT alıcısıydı, üç hastada hematolojik malignite vardı ve diğer üç hastada otoimmün hastalıklar için uzun süreli kortikosteroid tedavisi vardı.

                Çalışma popülasyonu, çok şiddetli sunumlarla karakterize edildi; tüm hastalar entübe edildi ve mekanik ventilasyona bağlandı ( n  = 145; %100) ve şiddetli solunum yetmezliği (en kötü Pa O 2 / F i O 2 : medyan, 60; IQR, 51-73) ve yüksek Basitleştirilmiş Akut Fizyoloji Skoru II gösterdi skor (medyan, 47; IQR, 33–62) Sonuç olarak çok sayıda hasta ( n  = 73/135; %54) venovenöz ECMO (vv-ECMO) desteğine yerleştirildi. Çalışma popülasyonunun çoğu, 1 mg/saat'ten fazla norepinefrin eşdeğeri ( n  = 94; %70) ile vazopresör desteğine ihtiyaç duydu ve üçüncüsüne renal replasman tedavisi ( n  = 41; %31) gerekti. Hastaların çoğu ( n = 112; %77'sinin mutlak lenfosit sayısı 1.000/ mm3'ün altındaydı . Yoğun bakım ünitesine kabulden sonraki 30. günde genel sağkalım %74,5 (108/145) idi. Mikolojik Test Sonuçları


                Toplam 475 solunum örneği (347 BAL, 120 trakeal aspirasyon ve 8 distal korumalı örnek) mikoloji laboratuvarına gönderildi (hasta başına ortalama 3,3) (çevrimiçi ekte Tablo E1) ve galaktomannan ile doğrudan incelemeye/kültüre sunuldu indeks tayini ve A. fumigatus , P. jiroveccii ve/veya Mucorales'i hedefleyen PCR . Toplam 532 serum örneklendi (hasta başına ortalama 3,7 örnek) ve galaktomannan, β- d -glukan ve/veya A. fumigatus ve Mucorales için test edildi .

                Hem solunum hem de serum örnekleri açısından 106 hastada (%73,1) negatif, 22 hastada (%15,2) bir pozitif test, 6 (%4,1) hastada iki pozitif test ve 11 (%7,6) üç veya daha fazla pozitif test vardı. En az bir mikolojik pozitif testi olan 39 hastadan ikisinde kandidiyazis ortamında izole pozitif β-glukan vardı ve beşi eksik veri nedeniyle ileri analizden çıkarıldı (dört hasta tek bir pozitif mikolojik testten sonra 48 saat içinde öldü. başka herhangi bir test ve mantar hipotezini doğrulamak veya çürütmek için herhangi bir yol ve bir hasta başka bir hastaneye nakledildi ve takibi kaybetti) (Şekil 1). Son olarak, klinik değerlendirme ve mikolojik belirteçlere göre, 25 hastada yanlış pozitif/klinik olarak ilgisiz kolonizasyon bulundu ve yedi hastaya olası veya varsayılan invaziv pulmoner küf enfeksiyonu (IPMI'ler) teşhisi kondu.

                Şekil 1.
                Çalışma akış şeması. * Candida türlerinin varlığı. solunum yolu veya kutanöz örnekler dahil edilmedi. † Bir hastada 10 gün sonra alınan BAL örneğinde tek pozitif β-glukan ve pozitif galaktomannan vardı. COVID-19 = koronavirüs hastalığı. IPMI'li Hastaların Özellikleri


                Altısı aspergillozlu ve biri fusariozisli olmak üzere yedi hastada (%4.8) varsayılan/olası IPMI tanısı korundu (Tablo 2). Hastaların altta yatan durumları dikkate alındığında, bir EORTC/MSG konak faktörü olan hastaların %20'sinde (4/20) pulmoner küf enfeksiyonu gelişirken, EORTC/MSG olmayan hastaların %2,4'ünde (3/123) pulmoner küf enfeksiyonu saptanmıştır. MSG konak faktörü (  Fisher kesin testi ile P = 0.007). İnvaziv bir küf enfeksiyonu geliştiren EORTC/MSG konakçı kriterlerine sahip dört hastadan üçü SOT alıcısıydı (iki böbrek; bir karaciğer) ve biri kortikosteroid tedavisi aldı (6 hafta boyunca >0,3 mg/kg/gün). Tablo 2.


                Sonradan İnvazif Solunum Küf Enfeksiyonları Geliştiren Şiddetli COVID-19'lu Yedi Yoğun Bakım Ünitesi Hastasının Klinik ve Mikolojik Özellikleri
                Demografik özellikleri
                Seks M M M M M F M
                yaş, yıl 75 49 57 40 50 62 72
                Altta yatan immünsüpresyonla ilişkili IFI için konak faktörleri Hiçbiri böbrek nakli Hiçbiri Hiçbiri böbrek nakli karaciğer nakli Steroidler (predinoz >0,3 mg/kg/gün)
                Altta yatan kronik hastalıklar hipertansiyon/obezite hipertansiyon/obezite Hipertansiyon/diyabet/obezite Hipertansiyon/obezite/tabagizm Dislipidemi/obezite Hipertansiyon/diyabet/obezite Hipertansiyon/dislipidemi
                Klinik özellikler
                Hastalığın başlangıcından YBÜ'ye kadar geçen süre, d 7 7 7 2 10 6 2
                Havalandırma İnvaziv mekanik ventilasyon İnvaziv mekanik ventilasyon İnvaziv mekanik ventilasyon vv-ECMO vv-ECMO İnvaziv mekanik ventilasyon vv-ECMO
                yoğun bakım ünitesi 8 15 32 30 77 18 63
                Orotrakeal entübasyon, d 8 15 28 30 77 18 63
                amin desteği Evet Evet HAYIR Evet Evet HAYIR HAYIR
                Diyaliz HAYIR Evet Evet HAYIR Evet Evet Evet
                En kötü P/F 140 77 50 58 80 40 52
                Spesifik COVID-19 tedavileri HAYIR HCQ/LPV HAYIR HAYIR HAYIR HCQ HCQ
                Mikoloji laboratuvar bulguları Solunum örnekleri Solunum örneği Trakeal aspirasyon BAL ve DPS BAL BAL BAL Trakeal aspirasyon BAL ve DPS
                ≥1 mikolojik testi pozitif olan solunum numunesi sayısı 2 2 5 0 8 1 1
                Kültür A. fumigatus A. fumigatus F. proliferatum Olumsuz A. fumigatus A. fumigatus A. fumigatus
                galaktommanan indeksi Olumsuz 1.5 1.7 0.7 3.2 yapılmadı Olumsuz
                A. fumigatus PCR kopya/ml (Log 10 ) 3.670 (3.6) 1.500.000 (6.2) Olumsuz Olumsuz 1.160.000 (6.1) 7.000.000 (6.8) Olumsuz
                Mukoral PCR Rhizopus/Mucor* Negative Negative Negative Rhizopus/Mucor† Negative Negative
                Serum Galactomannan index Negative Negative Negative 1.19 Negative Negative Negative
                β-d-glucan, pg/ml Negative Negative Negative 520 Negative Negative > 523
                A. fumigatus PCR copies/ml (Log10) Negative Negative Not performed 1,740 (3.2) Negative 1,164 (3.1) Negative
                Mucorales PCR Rhizopus/Mucor* Negative Negative Negative Rhizopus/Mucor† Negative Negative
                Invasive fungal infection characteristics
                Diagnosis Invasive pulmonary aspergillosis and mucormycosis, putative Invasive pulmonary aspergillosis, probable Invasive pulmonary fusariosis, putative Invasive pulmonary aspergillosis, putative (and candidemia) Invasive pulmonary aspergillosis and mucormycosis, probable Invasive pulmonary aspergillosis, probable Invasive pulmonary aspergillosis, probable
                Time from ICU admission to diagnosis, d 3 9 10 10 21 8 62
                Antifungal therapy No Voriconazole (400 mg b.i.d.) and caspofungin (70 mg/d) (D 14–D 17) Liposomal amphotericine B (7 mg/kg/d) (D 13–D 34) and caspofungin (70 mg/d) (D 15–D 30) Vorikonazol (400 mg bid) (D 11–D 18) sonra kaspofungin (70 mg/d) (D 18–D 28) Vorikonazol (400 mg bid) (D 22–D 58), sonra amfoterisin B (1 mg/kg/gün) (D 24–D 37) sonra kaspofungin (70 mg/gün) (D 37–D 44), sonra izavukonazol (200 mg/gün) mg/gün) (D 58–D 72) Vorikonazol (400 mg bid) ve kaspofungin (70 mg/gün) (D 9–D 12), ardından amfoterisin B (1 mg/kg/gün) (D 12–D 14) Kaspofungin (70 mg/gün) (D 57–D 62), ardından vorikonazol (300 mg bid) (D 63–D 79)
                Sonuç, teşhisten sonra D 30 Ölü Ölü Canlı Canlı Canlı Ölü Ölü
                Ayrı bir pencerede aç
                Kısaltmaların tanımı : bid = günde iki kez; COVID-19 = koronavirüs hastalığı; DPS = distal korumalı numune; HCQ = hidroksiklorokin; IFI = istilacı mantar enfeksiyonu; LPV = lopinavir; P /F = PaO2 / F ben02 ; vv-ECMO = venovenöz ekstrakorporeal membran oksijenasyonu.

                * Rhizopus/Mucor PCR, test edilen iki serumdan oluşan tek bir serumda zayıf pozitif (1/3 iyi reaksiyon gösteren) ve test edilen iki BAL'den birinde pozitif (3/3 iyi reaksiyon gösteren) idi.
                † Rhizopus/Mucor PCR test edilen 10'luk bir BAL'de ve test edilen iki serumluk bir serumda zayıf pozitifti (1/3 iyi reaksiyon gösteriyor).
                Çok değişkenli bir model analizinde, SOT ve kortikosteroid tedavileri, IPMI geliştirme riskinin artmasıyla ilişkiliydi (olasılık oranı [OR], 4,66; IQR, 1,98–7,34; P = 0,004 ve OR, 8,55; IQR, 6,8–10,3  ; P  = Sırasıyla 0.01), oysa hipertansiyon, kolesterol, diyabet veya fazla kilolu/obez olmak gibi altta yatan diğer durumlar için bir ilişki gözlenmedi (Tablo 3). Yoğun bakım ünitesinde kalış süresi, mekanik ventilasyon (gün), en kötü PaO2 / FiO2 veya vv-ECMO desteği gereksinimi de mantar süperenfeksiyonlarının insidansındaki artışla ilişkili değildi, ancak Basitleştirilmiş Akut Fizyoloji Skoru IPMI gelişen hastalarda II skoru daha yüksekti. Dikkat çekici bir şekilde, KOAH'lı hiçbir hasta IPMI geliştirmedi. Daha da önemlisi, özellikle COVID-19 tedavisi için kortikosteroid alan hiçbir hastada (esas olarak 10 gün boyunca deksametazon 20 mg/gün) daha sonra IPMI gelişmedi. IPMI, yoğun bakım ünitesine yatıştan ortalama 7 gün sonra (IQR, 2–56 gün) meydana geldi. Tablo 3.


                Şiddetli COVID-19 ile İlişkili Pnömoni Sırasında IPMI Olan ve Olmayan Hastaların Karşılaştırılması
                Demografik özellikler ve altta yatan koşullar Yaş, medyan (IQR), yıl 54,4 (48–64) 57,7 (49–67) — 0,55 — —
                Cinsiyet E, sayı (%) 98 (71) 6 (86) 2,44 (0,3–115,3) 0,67 — —
                Aktif sigara içen, n (%) 10 (7) 1 (14) 2,06 (0,04–19,9) 0.44 — —
                Hipertansiyon, n (%) 77 (56) 6 (86) 4,56 (0,5–214,8) 0.23 — —
                Kolesterol, n (%) 30 (22) 2 (29) 1,41 (0,1–9,1) 0,65 — —
                Diyabet, n (%) 44 (32) 2 (29) 0,84 (0,08–5,4) NS — —
                Fazla kilolu (vücut kitle indeksi >25 kg/m 2 ), n (%) 93 (67) 6 (86) 2,57 (0,3–121,6) 0,67 — —
                Kronik obstrüktif akciğer hastalığı, n (%) 9 (7) 0 (0) — — — —
                İnvaziv mantar enfeksiyonu için risk faktörleri Önceden var olan ana bilgisayar faktörü, n (%) * 16 (11) 4 (57) 9,72 (1,5–72,5) 0,007 7,54 (5,7–9,4) 0.03
                Hemopati, n (%) 3 (2) 0 (0) — 1 — —
                Hematopoietik kök hücre allogrefti 1 (0,7) 0 (0) — 1 — —
                Solid organ nakli, n (%) 11 (8) 3 (43) 8.28 (1.1–56.1) 0.02 4,66 (1,98–7,34) 0,004
                Uzun süreli (>3 hafta) kortikosteroid tedavisi >0,3 mg/kg, n (%) 3 (2) 1 (14) 7,16 (0,12–106,9) 0,18 8,16 (5,5–10,8) 0.1
                Uzun süreli (>3 hafta) kortikosteroid tedavisi (herhangi bir doz), n (%) 15 (11) 4 (57) 10,43 (1,6–78,2) 0,006 8,55 (6,8–10,3) 0.01
                COVID-19 bakımıyla bağlantılı kortikosteroid tedavisi, n (%) 22 (16) 0 (0) — — — —
                Enflamatuar belirteçler Lenfosit oranında nötrofil, medyan (IQR) 11 (8–18) 13 (11–14) — 0,84 — —
                C-reaktif protein, medyan (IQR), mg/L 217 (130–304) 213 (114–298) — 0.72 — —
                Ferritine, median (IQR), mg/L 1,956 (946–3,527) 2,609 (1,762–3,803) — 0.43 — —
                IL-6, median (IQR), pg/ml 250 (87–718) 181 (143–414) — 0.87 — —
                ICU management and clinical characteristics ICU stay, median (IQR), d 30 (15–50) 24 (14–62) — 0.89 — —
                SAPS II, median (IQR) 46 (31–60) 73 (54–85) — 0.01 — 0.02
                Intubation period, median (IQR), d 27 (15–44) 25 (11–55) — 0.98 — —
                Worst P/F, median (IQR) 60 (52–72) 58 (51–79) — 0.94 — —
                Extracorporeal membrane oxygenation, n (%) 70 (54) 3 (43) 0.62 (0.09–3.8) 0.70 — —
                Vasopressor support (>1 mg/h of noradrenalin), n (%) 88 (70) 6 (86) 2.64 (0.3–125.3) 0.67 — —
                Renal replacement therapy, n (%) 37 (29) 4 (57) 3.21 (0.5–23.0) 0.20 — —
                Hydroxychloroquine, n (%) 61 (44) 5 (71) 3.71 (0.6–40.4) 0.25 — —
                Kortikosteroid ikamesi (hidrokortizon süksinat) , n (%) 18 (14) 3 (43) 4,42 (0,6–28,6) 0,06 4,43 (2,8–6,1) 0.09
                Başvurudan sonra D 30'da hayatta kalma, n (%) 104 (76) 4 (57) 2,57 ( 0,4–18,4) 0.2 — —
                Ayrı bir pencerede aç
                Kısaltmaların tanımı : CI = güven aralığı; COVID-19 = koronavirüs hastalığı; IPMI = invazif pulmoner küf enfeksiyonu; IQR = çeyrekler arası aralık; OR = olasılık oranı; P /F = PaO2 / F ben02 ; SAPS = Basitleştirilmiş Akut Fizyoloji Puanı.

                İstatistiksel olarak anlamlı değerler kalın olarak görünür.

                * Donnelly ve meslektaşlarına göre Avrupa Kanser Araştırma ve Tedavisi ve Mikoz Çalışma Grubu Örgütü tarafından ortaklaşa tanımlandığı şekliyle ( 21 ). Yanlış Pozitif/Klinik Olarak İlgisiz Kolonizasyon Vakalarının Özellikleri


                En az bir mikolojik kriteri pozitif olan 39 hastanın toplam 25'i (bu hastaların %64,1'i ve tüm kohortun %17,2'si) yanlış pozitif testler veya klinik olarak ilgisiz kolonizasyon olarak kabul edildi. Yedi hastanın solunum örneklerinde izole edilmiş Aspergillus tür kültürü veya pozitif Aspergillus PCR vardı ve dört hastanın BAL örneklerinde pozitif GM (yani GM indeksi 1'in üzerinde) vardı. Bu dört hastadan ikisine, olumlu bir sonuçtan sonra YBÜ'den taburcu edilene kadar başka BAL uygulanmadı. Mikroskobik incelemelerde mantar kültürü ve AspergillusPCR negatifti ve antifungal tedavi olmaksızın durumları düzeldiği için yanlış pozitif olarak kabul edildi. Diğer iki hasta için, 6 gün sonra gerçekleştirilen ikinci bir BAL, GM için negatif olarak test edildi. Yine mikroskobik incelemeler, mantar kültürü. ve Aspergillus PCR da negatifti ve bu hastalar invaziv aspergilloz olarak kabul edilmedi. Son olarak, 14 hastanın serumlarında pozitif β-glukan izole edildi (10 gün sonra alınan bir BAL'de pozitif GM'ye sahip olan hasta dahil) (Şekil 1ve mikolojik sonuçların ayrıntıları için Tablo E2). Bu hastalarda, daha fazla antijen testi ve mantar kültürleri, ön kontrol numunelerinde sistematik olarak negatif bulundu. ECMO desteği, IPMI ile ilişkili değildi, ancak daha sık olarak mantar kolonizasyonu ve/veya klinik olarak ilgisiz mikolojik kolonizasyon ile ilişkilendirildi, ancak bu ilişki istatistiksel olarak anlamlı değildi (  Fisher kesin testi ile P = 0.08). Pozitif Mikolojik Kriterleri Olan Hastaların Sonuçları


                Yoğun bakım ünitesine yatışın 30. gününde genel sağkalım %74,5 (108/145) idi ve invaziv küf enfeksiyonu göstermeyen hastalarda daha yüksekti (Şekil 2A). Bir veya daha fazla pozitif mikolojik kriteri olan hastalarda, ilk pozitif mantar testinden sonra 30. Günde sağkalım, IPMI'li hastalarda %42,8 (3/7) iken, bu oran %86,9 (verilerin mevcut olduğu kişiler için 20/23) idi. invaziv mantar enfeksiyonunun kesin tanısı olmayan hastalar için ( P  = 0,006; OR, 15,3; %95 GA oranı, log-rank [Mantel-Cox] testi ile 2,17–108,9) (Şekil 2BVeTablo 4). Bu nedenle IPMI, yanlış pozitif/klinik olarak ilgisiz kolonizasyon ile karşılaştırıldığında daha yüksek bir mortalite riski ile ilişkilendirilmiştir.

                Şekil 2.
                Şiddetli koronavirüs hastalığı (COVID-19) olan YBÜ hastaları için hayatta kalma verileri. ( A ) 145 hasta için yoğun bakım ünitesine yatıştan sonraki 30. Günde sağkalım verileri. ( B ) İlk pozitif mikolojik testten sonra 30. Günde 30 hasta için hayatta kalma verileri. Muhtemel/varsayılan invaziv küf enfeksiyonu teşhisi konan hastalar, enfeksiyonu olmayan hastalardan daha kötü sonuçlara sahipti (log-rank [Mantel-Cox] testi). Tablo 4.


                IPMI'li ve Klinik Olarak İlgisiz Mikolojik Bulguları Olan Hastaların Özellikleri
                Demografik özellikler ve altta yatan koşullar Yaş, medyan (IQR), yıl 56 (45–61) 57,7 (49–67) 0,55
                Cinsiyet, E, sayı (%) 21 (84) 6 (86) 1
                Aktif sigara içen, n (%) 1 (4) 1 (14) 0.39
                Hipertansiyon, n (%) 13 (52) 6 (86) 0.19
                Kolesterol, n (%) 4 (16) 2 (29) 0,59
                Diyabet, n (%) 10 (40) 2 (29) 0.70
                Fazla kilolu (vücut kitle indeksi >25 kg/m 2 ), n (%) 18 (72) 6 (86) 0,64
                Kronik obstrüktif akciğer hastalığı, n (%) 0 (0) 0 (0) yok
                IPMI için risk faktörleri Ana bilgisayar faktörü, n (%) * 0 (0) 4 (57) 0,001
                Hemopati, n (%) 0 (0) 0 (0) yok
                Hematopoietik kök hücre allogreft, n (%) 0 (0) 0 (0) yok
                Solid organ nakli, n (%) 0 (0) 3 (43) 0,007
                Uzun süreli (>3 hafta) kortikosteroid tedavisi >0,3 mg/kg, n (%) 0 (0) 1 (14) 0,22
                Uzun süreli (>3 hafta) kortikosteroid tedavisi (herhangi bir doz), n (%) † 0 (0) 4 (57) 0,001
                COVID-19 bakımıyla bağlantılı kortikosteroid tedavisi, n (%) 8 (32) 0 (0) 0,15
                Enflamatuar belirteçler Lenfosit oranında nötrofil, medyan (IQR) 10 (9–13) 13 (11–14) 0,43
                C-reaktif protein, medyan (IQR), mg/L 240 (160–334) 213 (114–298) 0,54
                Ferritin, medyan (IQR), mg/L 2.193 (1.223–4.605) 2.609 (1.762–3.803) 0,93
                IL-6, medyan (IQR), pg/ml 524 (222–3.098) 181 (143–414) 0.49
                YBÜ yönetimi ve klinik özellikler Yoğun bakımda kalış süresi, medyan (IQR), d 53 (40–63) 24 (14–62) 0,16
                SAPS II, medyan (IQR) 54 (42–66) 73 (54–85) 0.10
                Entübasyon süresi, medyan (IQR), d 42 (33–59) 25 (11–55) 0,37
                En kötü P/F, medyan (IQR) 58 (51–62) 58 (51–79) 0,96
                Ekstrakorporeal membran oksijenasyonu, n (%) 20 (80) 3 (43) 0.08
                Vazopresör desteği (>1 mg/h noradrenalin), n (%) 15 (60) 6 (86) 0,37
                Renal replasman tedavisi, n (%) 7 (29) 4 (57) 0.20
                Kortikosteroid ikamesi (hidrokortizon hemisüksinat), n (%) 3 (13) 3 (43) 0.10
                Hayatta kalma verileri Kabulden sonra D 30'da, n (%) 23/25 (92) 4/7 (57) 0,003
                İlk pozitif mantar testinden sonra D 30'da, n (%) 20/23 (86,9) 3/7 (42,8) 0,006
                Ayrı bir pencerede aç
                Kısaltmaların tanımı : COVID-19 = koronavirüs hastalığı; IPMI = invazif pulmoner küf enfeksiyonu; IQR = çeyrekler arası aralık; P /F = PaO2 / F ben02 ; SAPS = Basitleştirilmiş Akut Fizyoloji Puanı.

                İstatistiksel olarak anlamlı değerler kalın olarak görünür.

                * Donnelly ve meslektaşlarına göre Avrupa Kanser Araştırma ve Tedavisi ve Mikoz Çalışma Grubu Örgütü tarafından ortaklaşa tanımlandığı şekliyle ( 21 ).
                † Avrupa Kanser Araştırma ve Tedavi Teşkilatı ve Mikoz Çalışma Grubu kriterlerinde tutulmayanlar dahil olmak üzere, herhangi bir dozaj ve tedavi süresi kombinasyonu.
                Git: Tartışma


                Sonuçlarımız, ciddi SARS-CoV-2 ile ilişkili pnömonisi olan ve altta yatan immünsüpresyonu olmayan hastaların pulmoner invaziv fungal sekonder enfeksiyon, özellikle aspergilloz açısından düşük risk altında göründüğünü göstermektedir.

                Çalışmamızın sınırlılıkları vardır. Retrospektif ve tek merkezlidir. Prospektif bir tasarım, belirli klinik kriterler konusunda kapsamlı olmamızı sağlardı. Ancak, mikoloji laboratuvarına gönderilen numune sayısının daha fazla olması gerekmediğine dikkat edilmelidir. Ayrıca, bu tek merkezli bir çalışma olmasına rağmen, ECMO desteğinin kullanımına yönelik özel yönelim gibi bazılarının kendine özgü özellikleri olan beş ayrı ve bağımsız birimi içerdiği de belirtilmelidir. Son olarak, hasta sayısına bağlı olarak, ikincil analizin sonuçları keşif niteliğindedir ve mantar süperenfeksiyonu insidansı için öngörücü bir model üretmeye yönelik değildir.

                Bugüne kadar ve bildiğimiz kadarıyla, bu popülasyonda istilacı mantar süperenfeksiyonlarının insidansı belirsizliğini koruyor. Mevcut çalışmalar esas olarak aspergilloz vaka raporlarını/küçük serileri ve aynı zamanda aspergilloz ile ilgilenen iki prospektif seriyi içermektedir . Bu ilk yayınlanan sonuçlar, en az iki noktayla ilgili birkaç endişe uyandırıyor. Birincisi, COVID-19 ve aspergilloz arasındaki nedensel ilişkiydi (yani, SARS-CoV-2 enfeksiyonunun kendi başına invaziv aspergilloz formlarını teşvik edip etmediği). Gerçekten de, rapor edilen vakalar arasında bazı hastalarda altta yatan KOAH veya astım gibi kronik solunum yolu hastalığı vardı ve solunum yollarına Aspergillus implantasyonu lehine bilinen farklı durumlar olan inhale veya sistemik kortikosteroid tedavisi alıyordu . Sonuç olarak, altta yatan predispozan durumları olan hastalarda ciddi COVID-19 ile ilişkili pnömoninin müteakip bir komplikasyonu olarak aspergillozun aspergillozdan net bir şekilde ayırt edilmesine dikkat edilmelidir.
                İkinci nokta, yakın zamanda van Arkel ve meslektaşlarına cevaben tartıştığımız gibi, şiddetli COVID-19 ile ilişkili pnömonisi olan bir hastanın solunum yolunda Aspergillus varlığının klinik önemi ve sürecin invazivliği sorusudur ( 20 ). Ayrıca, bazı hastalar herhangi bir antifungal tedavi olmaksızın olumlu sonuçlar göstermektedir ( 9). Aynı nedenle, bizim açımızdan, tek bir mantar antijeninin bir tanı kriteri olarak önemi, klinik iyileşme gösteren hastalarda dikkatli olunmalıdır. Bu çalışmada, birçok hasta varsayılan invaziv aspergilloz olarak sınıflandırılabilirdi. Altta yatan durum düzeldiğinde kendiliğinden düzelen invaziv bir enfeksiyöz sürecin invaziv olarak kabul edilmediği varsayılarak, bu vakalar bu çalışmada tutulmadı.

                Fungal solunum komplikasyonlarının genel insidansı (%4.8), daha önce bildirilenlerle karşılaştırıldığında çalışma popülasyonumuzda çok daha düşüktü. İnfluenzadan farklı olarak SARS-CoV-2, kritik hastalarda invaziv mantar enfeksiyonunu teşvik ediyor gibi görünmüyor. Bu yeni hastalıkta, akciğer hasarının kesin patofizyolojisi belirsizliğini koruyor, ancak alt solunum yollarında doğrudan viral replikasyondan ziyade birincil olarak kollateral sitokin kaynaklı inflamatuar hasara dayanıyor gibi görünüyor. Bu, influenza ile gözlenen farklılıkları kısmen açıklayabilir. Ek olarak, SARS-CoV-2 pandemisinin ilk dalgasından etkilenen ve yoğun bakım gerektiren popülasyon da farklıdır; genellikle mevsimsel influenza ile rapor edilenden daha yüksek oranda genç hasta ve daha az bağışıklığı baskılanmış hasta gösterir ( 7). Ayrıca bizim serimizde kortikosteroid alan hasta sayısı diğer serilere göre daha azdı ( 25 ). Nitekim gripte immünomodülatör yaklaşımlarla ilgili yanıltıcı veriler nedeniyle, şiddetli COVID-19 hastalarımıza başlangıçta kortikosteroid uygulanmadı. İkinci salgın dalgası Avrupa'yı kasıp kavururken bugüne kadar, kritik hastalar daha sık kortikosteroid alıyor. Bu nedenle, iki dönem arasında fungal süperenfeksiyon insidansını karşılaştırmak ilginç olacaktır.

                İnvazif aspergilloz, influenza pnömonisi ve ECMO desteği ile ilişkili olsun ya da olmasın, yoğun bakım ünitesinde kalış sırasında bağışıklığı yeterli hastaları etkileyebilen artık iyi bilinen bir komplikasyondur ( 26 , 27 ). Yakın tarihli bir çalışmada, vv-ECMO alan hastaların %7'sinde varsayılan aspergilloz ve %7'sinde Aspergillus kolonizasyonu vardı ( 28). Bununla birlikte, serimizde vv-ECMO desteği, IPMI ile ilişkili değildi ve mantar kolonizasyonu ve/veya klinik olarak alakasız mikolojik test ile potansiyel ilişkisi, daha fazla çalışmayı garanti eder. Bu arada, popülasyonumuzda vv-ECMO desteği alan hastaların yüksek oranı (%54), çalışmanın şiddetli COVID-19'da kurtarma tedavisi olarak kullanılan bu spesifik teknik için uzman bir merkezde yapılmış olmasıyla açıklanmaktadır. ( 29 ).

                İnvaziv aspergilloz tanısı, özellikle altta yatan konak risk faktörleri olmayan kritik hastalarda zor olmaya devam etmektedir. Bu ortamda, klinik kriterler genellikle göz ardı edilir ve varsa görüntüleme kriterlerinin yorumlanması zor olabilir. Bilgisayarlı tomografik tarama ve manyetik rezonans görüntüleme zamanla mantar enfeksiyonlarının teşhisinde önemli bileşenler haline geldi. Bizim serimizde, invaziv bir mantar süreci ile uyumlu kaviter lezyonları olan olası aspergillozlu bir hasta dışında neredeyse tüm hastalarda bu analizler yoktu. Reddedilemez teşhis unsuru olabilecek histoloji neredeyse hiçbir zaman elde edilemez. Bu nedenle, son zamanlarda antijen testinin dahil edilmesiyle gösterildiği gibi, sınıflandırmalar mikolojik kriterlere gurur vermektedir.22 , 30 , 31 ).

                Vakaların sınıflandırılmasındaki zorluklar, son araştırmalarda oluşturulan ve kullanılan tanı kriterlerinin çeşitliliği ile iyi bir şekilde gösterilmiştir. Bugüne kadar, COVID-19 ile ilişkili pulmoner aspergillozlu hastalar için neredeyse yayın sayısı kadar kriter vardır ( 9 , 11 , 14 , 16 , 17). Bu kriterlerin daha yeni mikolojik testleri (örneğin, PCR) içermesi gerektiğini kabul ediyoruz, ancak aynı zamanda klinik olarak ilgisiz vaka tanımlamasına (spontan olumlu sonuç veya örneğin test negatifliği). Daha doğru ve klinik olarak uygun olduklarına inandığımız için bu hususları vaka sınıflandırmamıza dahil ettik.

                Serimizde 25 hasta geçici solunum yolu kolonizasyonu veya yalancı pozitif antijen olarak kabul edildi. Bu hastaların yarısı ( n  = 14) yalnızca pozitif β-glukan testine sahipti; bu testin özgüllüğü olmadığı ve ayrıca ipliksi enfeksiyonlara duyarlılığı zayıftı.

                BAL'de galaktomannan saptaması, yoğun bakım ünitesindeki bağışıklığı yeterli hastalarda invaziv aspergillozun teşhisi için önemli bir araç haline geldi. BAL numunelerine odaklanırsak, sekiz hasta (%5.5) için 333 numuneden sadece 11'i (%3.3) pozitifti (yani, 1'in kesinlikle üzerinde bir indeks). Bunlardan üçü ayrıca BAL'de pozitif bir mantar kültürüne sahipti ve olası veya varsayılan bir istilacı küf enfeksiyonuna (IPMI grubu) sahip olarak sınıflandırıldı. Diğer dört hasta yanlış pozitif olarak kabul edildi ve bir hasta, GM-pozitif BAL sonucundan 2 gün sonra herhangi bir kontrol, başka herhangi bir pozitif test veya mantar hipotezini doğrulamak veya çürütmek için herhangi bir yol olmadan öldüğü için analizden çıkarıldı. Bu beş hastanın modifiye AspICU kriterlerine göre varsayılan aspergilloz olarak sınıflandırılmış olabileceğini kabul ediyoruz ( 7) veya influenza ile ilişkili aspergilloz kriterleri ( 32 ), ancak sonunda düzeldikleri veya uygun antifungal tedavi olmadan sonraki numunelerde negatif kontrole sahip oldukları için, bu tanının dikkate alınmaması gerektiğine inanıyoruz. Bununla birlikte, bu vakaları sınıflandırmayı seçseydik, pulmoner küf enfeksiyonlarının insidansı, nispeten düşük olan %8,3'e yükselirdi.

                Şiddetli COVID-19 ile ilişkili pnömonisi olan YBÜ hastalarında invaziv mantar enfeksiyonu tanısını derhal korumak veya dışlamak için vakaları mümkün olduğunca verimli bir şekilde araştırmak için çaba gösterilmelidir. Halihazırda bilinen risk faktörleriyle başvuran hastalara, özellikle SOT alıcılarına özel dikkat gösterilmelidir. Ayrıca, mikolojik kriterlerin çoğu özgüllükten yoksun olmasına rağmen yoğun bakım ünitesinde fungal süperinfeksiyonların teşhisinde kilit rol oynadığından, aşırı teşhise ve aşırı antifungal tedavi kullanımına yol açabileceklerinden, çoğaltılmalı ve dikkatli bir şekilde analiz edilmelidirler. Sonuçlar


                Sonuç olarak, mevcut veriler, şiddetli COVID-19 ile ilişkili pnömoni formları olan hastalarda ikincil bir invaziv pulmoner mantar enfeksiyonu geliştirme riskinin düşük olduğunu göstermektedir. Salgın yayılmaya devam ettikçe, bu sonuçları doğrulamak için başka raporlar gerekir.

                Git: Dipnotlar


                Yazar Katkıları: AF çalışmayı tasarladı, veri toplama ve analizine katıldı, istatistiksel analiz gerçekleştirdi ve makaleyi yazdı. AL, çalışma tasarımına ve veri toplama ve analizine katıldı, istatistiksel analiz gerçekleştirdi ve yazılı olarak katıldı. JM, SD, J.-MC, AM ve C.-EL hastaların bakımına ve klinik veri toplama ve analizine katıldı. CP çalışma tasarımına ve veri toplama ve analizine katıldı. A.-GM viroloji analizi yaptı. MB çalışma tasarımına, veri toplama ve analizine ve yazımına katıldı. Tüm yazarlar makalenin yazılmasına katkıda bulunmuştur.


                Bu makalenin ilgili bir başyazısı vardır .


                Bu makalenin, bu sayının www.atsjournals.org adresindeki içindekiler bölümünden erişilebilen çevrimiçi bir eki vardır .


                2 Aralık 2020 tarihinde DOI: 10.1164/rccm.202009-3400OC olarak Basında İlk Olarak Yayınlandı


                Yazar açıklamaları bu makalenin metniyle birlikte www.atsjournals.orgadresinde mevcuttur.


                Git: Referanslar

                1. Mehta P, McAuley DF, Brown M, Sanchez E, Tattersall RS, Manson JJ HLH Across Speciality Collaboration, Birleşik Krallık. COVID-19: sitokin fırtınası sendromlarını ve bağışıklık sistemini baskılamayı düşünün. Lancet . 2020; 395 :1033–1034. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                2. Zhou F, Yu T, Du R, Fan G, Liu Y, Liu Z ve diğerleri. Çin'in Wuhan kentinde COVID-19 ile yatan erişkin hastaların mortalitesi için klinik seyir ve risk faktörleri: retrospektif bir kohort çalışması. Lancet . 2020; 395 :1054–1062. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                3. Önder G, Rezza G, Brusaferro S. İtalya'da COVID-19'a bağlı olarak ölen hastaların vaka-ölüm hızı ve özellikleri. JAMA _ 2020; 323 :1775–1776. [Yayınlanmış yazım hatası JAMA 323:1619'da görünmektedir .] [ PubMed ] [ Google Scholar ]
                4. D'Antiga L. Coronavirüsler ve bağışıklığı baskılanmış hastalar: üçüncü salgın sırasındaki gerçekler. Karaciğer Nakli 2020; 26 :832–834. [ PubMed ] [ Google Akademik ]
                5. Kore Bulaşıcı Hastalıklar Derneği ve Kore Hastalık Kontrol ve Önleme Merkezleri. 19 Ocak - 10 Mart 2020 tarihleri ​​arasında Kore Cumhuriyeti'nde 54 koronavirüs hastalığı 2019 ölüm vakası üzerine analiz. J Korean Med Sci . 2020; 35 :e132. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                6. Hwang DM, Chamberlain DW, Poutanen SM, Low DE, Asa SL, Butany J. Toronto'da ciddi akut solunum sendromunun pulmoner patolojisi. Mod Yolu . 2005; 18 :1–10. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                7. Schauwvlieghe AFAD, Rijnders BJA, Philips N, Verwijs R, Vanderbeke L, Van Tienen C, et al. Hollandalı-Belçikalı Mikoz çalışma grubu. Şiddetli influenza ile yoğun bakım ünitesine başvuran hastalarda invaziv aspergilloz: retrospektif bir kohort çalışması. Lancet Solunum Med . 2018; 6 :782–792. [ PubMed ] [ Google Akademik ]
                8. Schwartz IS, Friedman DZP, Zapernick L, Dingle TC, Lee N, Sligl W, et al. İnfluenza ile ilişkili yüksek invaziv pulmoner aspergilloz oranları evrensel olmayabilir: Alberta, Kanada'dan retrospektif bir kohort çalışması. Klinik Enfeksiyon Dis . 2020; 71 :1760–1763. [ PubMed ] [ Google Akademik ]
                9. Alanio A, Dellière S, Fodil S, Bretagne S, Mégarbane B. COVID-19'lu kritik hastalarda varsayılan invaziv pulmoner aspergilloz prevalansı. Lancet Solunum Med . 2020; 8 :e48–e49. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                10. Blaize M, Mayaux J, Nabet C, Lampros A, Marcelin AG, Thellier M, et al. İmmün yetmezliği olmayan bir hastada ölümcül invaziv aspergilloz ve koronavirüs hastalığı. Emerg Infect Dis . 2020; 26 :1636–1637. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                11. Koehler P, Cornely OA, Böttiger BW, Dusse F, Eichenauer DA, Fuchs F, et al. COVID-19 ile ilişkili pulmoner aspergilloz. mikozlar _ 2020; 63 :528–534. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                12. Nasir N, Farooqi J, Mahmood SF, Jabeen K. Şiddetli COVID-19 pnömonisi ile başvuran hastalarda COVID-19 ile ilişkili pulmoner aspergilloz (CAPA): Pakistan'dan gözlemsel bir çalışma. mikozlar _ 2020; 63 :766–770. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                13. Prattes J, Valentin T, Hoenigl M, Talakic E, Reisinger AC, Eller P. Yoğun Bakım Ünitesinde COVID-19'u komplike eden invaziv pulmoner aspergilloz - bir vaka raporu Med Mycol Case Rep [baskıdan önce çevrimiçi] 11 Mayıs 2020 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                14. van Arkel ALE, Rijpstra TA, Belderbos HNA, van Wijngaarden P, Verweij PE, Bentvelsen RG. COVID-19 ile ilişkili pulmoner aspergilloz. Am J Respir Crit Care Med . 2020; 202 :132–135. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                15. Bartoletti M, Pascale R, Cricca M, Rinaldi M, Maccaro A, Bussini L, et al.PREDICO çalışma grubu COVID-19 entübe hastalar arasında invaziv pulmoner aspergilloz epidemiyolojisi: ileriye dönük bir çalışma Clin Infect Dis [baskıdan önce çevrimiçi] 28 Temmuz 2020 [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
                16. White PL, Dhillon R, Cordey A, Hughes H, Faggian F, Soni S, et al. Yoğun Bakım Ünitesinde COVID-19 ile ilişkili invaziv mantar hastalığını teşhis etmek için ulusal bir strateji Clin Infect Dis [baskıdan önce çevrimiçi] 29 Ağustos 2020 [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
                17. Lamoth F, Glampedakis E, Boillat-Blanco N, Oddo M, Pagani JL. Kritik hastalığı olan COVID-19 hastaları arasında invaziv pulmoner aspergilloz insidansı. Clin Microbiol Infect . 2020; 26 :1706–1708. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                18. Poignon C, Blaize M, Vezinet C, Lampros A, Monsel A, Fekkar A. Şiddetli COVID-19'lu immün sistemi yetersiz, kritik derecede hasta bir hastada invaziv pulmoner fusariosis. Clin Microbiol Infect . 2020; 26 :1582–1584. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                19. Blaize M, Mayaux J, Luyt CE, Lampros A, Fekkar A. COVID-19 ile ilişkili solunum yetmezliği ve lenfopeni, pnömosistoz ile ilişkili görünmüyor Am J Respir Crit Care Med [baskıdan önce çevrimiçi] 17 Eylül 2020 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
                20. Fekkar A, Poignon C, Blaize M, Lampros A. COVID-19 sırasında mantar enfeksiyonu: Aspergillus , ikincil invaziv aspergilloz anlamına mı geliyor? Am J Respir Crit Care Med . 2020; 202 :902–903. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                21. Donnelly JP, Chen SC, Kauffman CA, Steinbach WJ, Baddley JW, Verweij PE, et al. Kanser araştırma ve tedavisi için Avrupa organizasyonundan ve mikozlar çalışma grubu eğitim ve araştırma konsorsiyumundan invaziv mantar hastalığının konsensüs tanımlarının gözden geçirilmesi ve güncellenmesi. Klinik Enfeksiyon Dis . 2020; 71 :1367–1376. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                22. Imbert S, Meyer I, Palous M, Brossas JY, Uzunov M, Touafek F, et al. Hematolojik ve hematolojik olmayan durumları olan hastalarda aspergillozun teşhisi ve prognozu için bronkoalveoler lavaj sıvısında Aspergillus PCR. Ön Mikrobiyol . 2018; 9 :1877. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                23. Meliani L, Develoux M, Marteau-Miltgen M, Magne D, Barbu V, Poirot JL, et al. Pneumocystis jirovecii tespiti için gerçek zamanlı kantitatif PCR testi. J Ökaryot Mikrobiyol . 2003; 50 :651. [ PubMed ] [ Google Akademik ]
                24. Millon L, Larosa F, Lepiller Q, Legrand F, Rocchi S, Daguindau E, et al. Bağışıklığı baskılanmış hastalarda mukormikozun erken teşhisi için serumda dolaşan DNA'nın kantitatif polimeraz zincir reaksiyonu tespiti. Klinik Enfeksiyon Dis . 2013; 56 :e95–e101. [ PubMed ] [ Google Akademik ]
                25. Du Y, Tu L, Zhu P, Mu M, Wang R, Yang P ve diğerleri. Wuhan'dan 85 ölümcül COVID-19 vakasının klinik özellikleri: retrospektif bir gözlemsel çalışma. Am J Respir Crit Care Med . 2020; 201 :1372–1379. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                26. Loughlin L, Hellyer TP, White PL, McAuley DF, Conway Morris A, Posso RB, et al. Birleşik Krallık yoğun bakım ünitelerinde ventilatörle ilişkili pnömoni şüphesi olan hastalarda pulmoner aspergilloz. Am J Respir Crit Care Med . 2020; 202 :1125–1132. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                27. Blot SI, Taccone FS, Van den Abeele AM, Bulpa P, Meersseman W, Brusselaers N, et al. AspICU Çalışma Müfettişleri. Kritik hastalarda invaziv pulmoner aspergillozu teşhis etmek için klinik bir algoritma. Am J Respir Crit Care Med . 2012; 186 :56–64. [ PubMed ] [ Google Akademik ]
                28. Rodriguez-Goncer I, Thomas S, Foden P, Richardson MD, Ashworth A, Barker J, et al. İnvaziv pulmoner aspergilloz, veno-venöz ekstrakorporeal membran oksijenasyonu alan kritik hastalarda olumsuz klinik sonuçlarla ilişkilidir. Eur J Clin Microbiol Infect Dis . 2018; 37 :1251–1257. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                29. Falcoz PE, Monnier A, Puyraveau M, Perrier S, Ludes PO, Olland A, et al. COVID-19 ile ilişkili akut solunum sıkıntısı sendromu olan kritik hastalarda ekstrakorporeal membran oksijenasyonu: çabaya değer mi? Am J Respir Crit Care Med . 2020; 202 :460–463. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                30. De Vlieger G, Lagrou K, Maertens J, Verbeken E, Meersseman W, Van Wijngaerden E. Solunum yolu enfeksiyonu semptomları olan bağışıklığı baskılanmış kritik hastalarda invaziv aspergilloz için tanısal bir test olarak Beta-D-glukan tespiti: otopsi tabanlı çalışmak. J Clin Microbiol . 2011; 49 :3783–3787. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
                31. Pfeiffer CD, Fine JP, Safdar N. Bir galaktomannan testi kullanılarak invazif aspergilloz teşhisi: bir meta-analiz. Klinik Enfeksiyon Dis . 2006; 42 :1417–1427. [ PubMed ] [ Google Akademik ]
                32. Verweij PE, Rijnders BJA, Brüggemann RJM, Azoulay E, Bassetti M, Blot S, et al. YBÜ hastalarında influenza ile ilişkili pulmoner aspergillozun gözden geçirilmesi ve bir vaka tanımı önerisi: uzman görüşü. Yoğun Bakım Med . 2020; 46 :1524–1535. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]

                Yorum yap


                • #9
                  Beta Glukan Nedir? Beta Glukan'ın Bağışıklık Sitemine Faydaları Nelerdir?

                  Candida albicans Hücre Duvarında β-1,3-Glukan Açığa Çıkaran Özelliklerin Doğası ve Modülasyonu

                  Leandro José de Assis , a , * Judith M. Bain , b Corin Liddle , c Ian Leaves , a Christian Hacker , c Roberta Peres da Silva , a Raif Yuecel , d Attila Bebes , d David Stead , e Delma S. Childers , b Arnab Pradhan , Kevin Mackenzie , Katherine Lagree , j Daniel E. Larcombe , Qinxi Ma a Gabriela Mol Avelar , b Mihai G. Netea , f , g , h Lars P. Erwig , b , i Aaron P. Mitchell , j Gordon D. Brown , a Neil AR Gow , a ve Alistair JP Brown
                  Michael Lorenz, Editör
                  Texas Üniversitesi Sağlık Bilimleri Merkezi'nden Michael Lorenz ;
                  Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                  a Tıbbi Araştırma Konseyi Tıbbi Mikoloji Merkezi, Exeter Üniversitesi, Exeter, Birleşik Krallık
                  b Aberdeen Mantar Grubu, Tıp Bilimleri Enstitüsü, Aberdeen Üniversitesi, Aberdeen, Birleşik Krallık
                  c Biyogörüntüleme Ünitesi, Exeter Üniversitesi, Exeter, Birleşik Krallık
                  d Exeter Cytomics Merkezi, Exeter Üniversitesi, Exeter, Birleşik Krallık
                  e Aberdeen Proteomik Tesisi, Rowett Enstitüsü, Aberdeen Üniversitesi, Aberdeen, Birleşik Krallık
                  f İç Hastalıkları Bölümü, Radboud Üniversitesi Tıp Merkezi, Nijmegen, Hollanda
                  g Radboud Bulaşıcı Hastalıklar Merkezi, Radboud Üniversitesi Tıp Merkezi, Nijmegen, Hollanda
                  h İmmünoloji ve Metabolizma Bölümü, Yaşam ve Tıp Bilimleri Enstitüsü (LIMES), Bonn Üniversitesi, Bonn, Almanya
                  i Johnson-Johnson İnovasyon, EMEA İnovasyon Merkezi, Londra, Birleşik Krallık
                  j Mikrobiyoloji Bölümü, Georgia Üniversitesi, Atina, Georgia, ABD
                  Sorumlu yazar.
                  Leandro José de Assis: ku.ca.htuomylp@sissaed.ordnael ; Alistair JP Brown: ku.ca.retexe@nworB.PJA
                  * Şimdiki adres: Leandro José de Assis, Beyin Tümörü Araştırma Merkezi, Plymouth Üniversitesi, Plymouth, Birleşik Krallık.
                  Yazarlar herhangi bir çıkar çatışması beyan etmemektedir. İlişkili Veriler

                  Tamamlayıcı Malzemeler
                  Git: SOYUT


                  Candida albicans, patolojiye neden olmadan, mukozal yüzeylerde ve gastrointestinal sistemde kommensal olarak bulunur. Bununla birlikte, bu mantar aynı zamanda antifungal bağışıklık savunması tehlikeye girdiğinde mukozal ve sistemik enfeksiyonların yaygın bir nedenidir. Antifungal konak savunmalarının aktivasyonu, β-1,3-glukan gibi mantar patojeni ile ilişkili moleküler modellerin (PAMP'ler) tanınmasına bağlıdır. C. albicans'ta çoğu β-1,3-glukan, dış mannan tabakası tarafından gizlenen iç hücre duvarında bulunur, ancak bazı β-1,3-glukan hücre yüzeyinde açığa çıkar. Laktat, C. albicans gibi konak sinyallerine yanıt olarakhücre yüzeyinden açığa çıkan β-1,3-glukanı tıraş eden ve böylece fagositik tanımayı azaltan Xog1 ekzoglukanazı indükler. Burada β-1,3-glukanın tomurcuk izlerinde ve maya hücrelerinin yan duvarındaki noktasal odaklarda açığa çıktığını, bu açığa çıkan β-1,3-glukanın fagositik saldırı sırasında hedeflendiğini ve laktat kaynaklı maskelemenin azaldığını gösteriyoruz. Tomurcuk izlerinde ve punktat odaklarda β-1,3-glukan maruziyeti. β-1,3-Glukan maskelemesi, protein kinaz A (PKA) sinyaline bağlıdır. İnaktive edici PKA'nın veya onun korunmuş aşağı akış efektörleri Sin3 ve Mig1/Mig2'nin C. albicans sekretomundaki Xog1 ve Eng1 glukanaz miktarlarını etkilediğini ve β-1,3-glukan maruziyetini modüle ettiğini ortaya koyuyoruz. Ayrıca, rahatsız edici PKA, Sin3 veya Mig1/Mig2, laktata maruz kalan C. albicans'ın virülansını azaltır.Galleria'daki hücreler . Birlikte ele alındığında veriler, β-1,3-glukan maskelemenin Candida patojenitesine katkıda bulunduğu fikriyle tutarlıdır .

                  ANAHTAR KELİMELER: Candida albicans , hücre duvarı, β-1,3-glukan, protein kinaz A, Mig1, Mig2, Sin3, Xog1, Eng1
                  Git: GİRİİŞ


                  Patojenik mantarlar, küresel olarak insan sağlığına büyük bir yük getirmektedir ( 1 ). Yalnızca Candida enfeksiyonları için , yüz milyondan fazla kadın tekrarlayan vajinit enfeksiyonlarından muzdariptir ve sistemik Candida enfeksiyonları her yıl 200.000'den fazla kişiyi öldürür ( 1 ). Antifungal tedavi ile bile, kan dolaşımı enfeksiyonları için ölüm oranları %10 ila %20 arasındadır ( 2 ).

                  Bir kişinin mantar enfeksiyonuna duyarlılığı büyük ölçüde bağışıklık durumuna bağlıdır ( 3 , – 5 ). Örneğin, nötropenik hastalar sistemik kandidiyazis, aspergilloz ve kriptokokal menenjite duyarlıyken, T hücresi aracılı bağışıklıkta kusurları olan hastalar sıklıkla mukozal Candida enfeksiyonlarından muzdariptir ( 1 , 5 , 6 ). Kolonize olan mantar hücrelerinin bağışıklık tanıması, makrofajlar ve nötrofiller gibi doğuştan gelen bağışıklık hücreleri tarafından ifade edilen ve bazıları üzerinde bulunan patojenle ilişkili moleküler modellerin (PAMP'ler) varlığını saptayan konakçı reseptörler (örüntü tanıma reseptörleri [PRR'ler]) tarafından yürütülür. mantar hücrelerinin yüzeyi ( 7 ,– 10 ). Mantar PAMP'lerinin konakçı PRR'ler tarafından tanınması, fagositoz, nötrofil hücre dışı tuzaklarının üretimi ve bağışıklık hücrelerini enfeksiyon bölgesine toplayan ve adaptif bağışıklığı aktive eden sitokinlerin ve kemokinlerin salınmasını içeren bir dizi antifungal yanıtı tetikler ( 5 , 9 , - 12 ). PAMP β-1,3-glukan, C tipi lektin reseptörü dektin-1 (CLEC6A), nükleotid-oligomerizasyon alanı (NOD) benzeri reseptör NLRP3 ve kompleman reseptörü 3 gibi reseptörler tarafından tanınır ( 9 , 13 , – 15). Bu β-1,3-glukan reseptörlerinden dektin-1, antifungal bağışıklıkta baskın bir rol oynar, ancak tam bir antifungal yanıt için ek PAMP'lerin tanınması gerekir ( 16 , – 22 ).

                  Candida albicans gibi memelilerin kommensalleri olarak gelişen fırsatçı mantar patojenleri , antifungal bağışıklık savunmalarından kaçmak için stratejiler geliştirmiştir ( 23 , 24 ). Örneğin, C. albicans , aspartat proteazları ve süperoksit dismutazları salgılayarak bağışıklık savunmalarına aktif olarak karşı koyabilir ( 25 , – 27 ). Mantar ayrıca hifal gelişimi, fagolizozomal pH'ın aktif manipülasyonu, güçlü oksidatif stres tepkilerinin indüklenmesi ve glikoz için metabolik rekabet yoluyla fagositik öldürmeden kaçabilir ( 28 , – 34 ).

                  Ek bir strateji, bağışıklık tanımayı önlemektir. Örneğin, C. albicans'ın düşük seviyelerde β-1,3-glukan maruziyeti , gastrointestinal sistemin gelişmiş kolonizasyonu ile ilişkilidir ( 35 ). β-1,3-Glukan, C. albicans hücre duvarının ( 36 , 37 ) iç tabakasının önemli bir bileşenidir ve normalde mannan fibrillerinin dış tabakası ( 8 , 38 , – 41 ) tarafından immün tanımadan gizlenir. Bu mantar aynı zamanda β-1,3-glukan maruziyetini ( 42 , 43 ) ve C. albicans'ı azaltabilen β-1,3-glukanazları (Xog1 ve Eng1) ifade eder.Bir fagositik saldırı yakın olduğunda bu enzimlerin ekspresyonunu indüklemek için mekanizmalar geliştirmiş gibi görünmektedir ( 44 ). Mantar, β-1,3-glukan maskelemesini modüle etmek ve böylece fagositik tanımayı ve sitokin indüksiyonunu etkilemek için laktat, hipoksi, demir sınırlaması ve ortam pH'ı gibi konakçı tarafından uygulanan spesifik sinyalleri kullanır (43 , 45 , 46 ) .

                  Laktat, hipoksi veya demir sınırlamasına yanıt olarak β-1,3-glukanın maskelenmesi, evrimsel olarak korunan farklı sinyal yolları aracılığıyla etkinleştirilir ( 43 , 47 , 48 ). Laktat, memeli laktat reseptörünün ( 49 ) bir homologu olan Gpr1 yoluyla β-1,3-glukan maskelemesini aktive ederken, hipoksik sinyal mitokondriyal reaktif oksijen türleri ( 47 ) aracılığıyla iletilir ve demir sınırlaması, Ftr1 demir alıcısı ( 48 ) aracılığıyla iletilir. ). Bu sinyaller, β-1,3-glukan maskelemesi için gerekli olan protein kinaz A'da (PKA) birleşir ( 47 , 48) .). Bununla birlikte, PKA'nın β-1,3-glukanaz maskelemesine aracılık etmek için β-1,3-glukanaz seviyelerini düzenlediği aşağı akış mekanizmaları belirsizliğini koruyor.

                  Bu çalışmada, C. albicans'ta β-1,3-glukan maruziyetinin doğasını araştırdık ve iki ana tip β-1,3-glukan açığa çıkaran özelliği ortaya çıkardık: septal bağlantılarda ve tomurcuk izlerinde ve punktat odaklarda yanal hücre duvarı. Bunların her ikisi de immün tanımaya katkıda bulunur ve her ikisi de laktat kaynaklı β-1,3-glukan maskelemesi ile zayıflatılır. Ayrıca, diğer mantarlarda ( 50 , – 59 ) hücresel süreçlerin PKA düzenlemesine aracılık ettiği bilinen akış aşağı efektörlerin, C. albicans'ta β-1,3-glukan maskelemesini etkileyip etkilemediğini de test ettik . C. albicans'ta (Mig1 ve Mig2) histon deasetilaz Sin3 ve Saccharomyces cerevisiae Migl'in iki homologu ( 50) β-1,3-glukan maruziyetini modüle ettiği bulunmuştur. Bu bulguların bağışıklık tespiti ve mantar enfeksiyonu için önemli etkileri vardır.

                  Git: SONUÇLAR


                  Tomurcuk izlerinde ve punktat odaklarda β-1,3-glukan maruziyetinin düzenlenmesi.


                  Laktat kaynaklı maskelemenin β-1,3-glukan maruziyeti üzerindeki etkilerini septal bağlantılarda ve tomurcuk izlerinde ve C. albicans'ın yanal hücre duvarındaki noktasal odaklarda ölçtük . Bu, Fc-dectin-1 ile lekelenmiş C. albicans SC5314 hücrelerinin (bir vahşi tip [WT] klinik izolatı) floresan görüntülemesi ve bireysel β-'lerin floresans yoğunluğunu ölçmek için üç boyutlu (3D) görüntülerin miktar tayini ile elde edildi. 1,3-glukan açığa çıkaran özellikler. Septal bağlantılar ve tomurcuk izleri nispeten büyüktü (>2 μm 3 ), oysa noktasal odaklar nispeten küçüktü (<2 μm 3 ) (Şekil 1aVe​ve B).B). Laktata maruz kalan C. albicans hücreleri, kontrollere göre önemli ölçüde daha az noktasal odak sergiledi ve bu odakların floresans yoğunluğu önemli bir azalma gösterdi (Şekil 1bVe​ve C).C). Laktata maruz bırakılan glikozla büyütülen C. albicans hücreleri ayrıca daha az β-1,3-glukan açığa çıkaran tomurcuk izi gösterdi (Şekil 1a). Bu tomurcuk izleri, floresans yoğunluklarında sadece hafif bir azalma gösterdi, bu istatistiksel olarak anlamlı değildi (Şekil 1d). Bu değişiklikler, laktata maruz kalan ve kalmayan hücreler için hacme göre gözlemlenen β-1,3-glukan açığa çıkaran nesnelerin frekanslarına yansıdı (Şekil 1e) ve bu hücreler için genel floresan skorunda (gözlenen tüm özelliklerin sayısını, hacmini ve floresan yoğunluğunu birleştirir) (Şekil 1f). Bu nedenle kantitatif floresan görüntüleme, akış sitometrisi ile gözlenen laktat kaynaklı β-1,3-glukan maskeleme fenotipini doğruladı ( 43 , 48 , 49 ).

                  ŞEKİL 1
                  Noktalı odaklarda ve tomurcuk yaralarında β-1,3-glukan maruziyetinin düzenlenmesi. Noktasal odaklarda ve tomurcuk yaralarında β-1,3-glukan maruziyeti üzerindeki laktatın etkisini incelemek için kantitatif floresan mikroskopi kullanıldı. C. albicans SC5314 hücreleri, GYNB (Glu; kırmızı) veya laktat (GluLac; mavi) içeren GYNB içinde büyütüldü, sabitlendi ve Fc-dektin-1 ile boyandı. Bu hücreler bir Nikon Eclipse Ti UltraVIEW VoX dönen disk mikroskobu kullanılarak incelendi ve β-1,3-glukan açığa çıkaran özelliklerin hacmi ve yoğunluğu Volocity yazılımı ile ölçüldü: septal bağlantılar ve tomurcuk izleri, >2 μm3 ; noktalı odaklar, <2 μm3 . (a) β-1,3-glukan açığa çıkaran tomurcuk izlerinin dağılımı. (b) 2 μm3'ten küçük hacimler gösteren β-1,3-glukan açığa çıkaran noktasal odakların sayısıhücre başına. (c) Bu noktalı odakların ortalama floresan yoğunluğu (parlaklık). (d) Bu tomurcuk izlerinin ortalama floresan yoğunluğu (parlaklık). (e) Gözlemlenen olayların sayısını gösteren nesne hacmi. (f) Laktat içeren GYNB veya GYNB içinde büyütülen hücreler için floresan skorları. Bu floresan skoru, hücre başına tüm β-1,3-glukan açığa çıkaran özelliklerin sayısını, hacmini ve parlaklığını birleştirir. Ortalamalar ve standart sapmalar, her koşul için toplam yaklaşık 850 hücrenin analiz edildiği dört bağımsız deneyden elde edilen veriler içindir. Veriler, eşleştirilmemiş bir t testi (*, P  < 0.05) kullanılarak analiz edildi.

                  Makrofajlar, C. albicans hücre duvarındaki β-1,3-glukan açığa çıkaran özellikleri hedefler .


                  β-1,3-glukanın, antifungal immün yanıtları uyaran bir PAMP olduğu ( 13 , 60 , – 62 ) ve C. albicans tarafından β-1,3-glukan maskelemesinin doğuştan gelen immün sistem tarafından tanınmayı ve sitokin üretimini azalttığı iyi bilinmektedir. hücreler ( 43 , 45 , – 49 , 63 , 64 ). Bu nedenle, makrofajların C. albicans hücrelerini tanımak ve fagositoz yapmak için mantar hücre duvarındaki β-1,3-glukan açığa çıkaran özellikleri kullanabileceğini düşündük . Bunu test etmek için C. albicans arasındaki etkileşimleri inceledik.yüksek hızlı hızlandırılmış video mikroskobu ile fare kemik iliği kaynaklı makrofajlar (BMDM'ler) ( ek materyaldeki Videolar S1 ve S2'ye bakın). C. albicans hücreleri glikoz içinde büyütüldü ve laktata maruz bırakıldı veya bırakılmadı. Bu deneyler için hücreler Fc-dektin-1 ile boyanmadı, çünkü bunun mantar tanımaya katkıda bulunan β-1,3-glukan-PRR etkileşimlerine müdahale etmesi muhtemeldi. Bunun yerine, BMDM'lerin başlangıçta C. albicans'ı bağladığı bölgeleri izledik.Diferansiyel girişim kontrastı (DIC) ile canlı görüntüleme ile hücreler. Anlamlı bir şekilde, BMDM'ler en sık β-1,3-glukan maruziyetini gösteren hücre duvarı bölgelerine (ana hücrelerin distal tomurcuk izleri ve ana ve yavru hücreler arasındaki septal bağlantı noktaları) bağlanır ve BMDM'ler daha az sıklıkla laterale bağlanır. hücre çeperi (Şekil 2a).

                  İNCİR. 2
                  Makrofajlar, C. albicans hücre duvarındaki β-1,3-glukan açığa çıkaran özellikleri hedefler . C. albicans SC5314 hücreleri, GYNB (Glu; kırmızı) veya laktat (GluLac; mavi) içeren GYNB içinde büyütüldü, sabitlendi ve yıkandı. Bu C. albicans hücreleri daha sonra BMDM'lerle (1:3 makrofaj-maya hücre oranı) karıştırıldı ve makrofaj-mantar etkileşimleri, 60 dakika boyunca 5 saniyelik aralıklarla canlı video mikroskobu ile izlendi. (a) Bir BMDM'nin ilk eklendiği bir hedef C. albicans hücresi üzerindeki bölge izlendi. (b) Bu ilk bağlanmadan C. albicans hücresinin fagositozuna yutulma süresi de (saniye cinsinden) kaydedildi. Veriler, koşul başına üç bağımsız videodan alınmıştır: n = glikoz için 48 olay; n  = glukoz artı laktat için 52 olay. Glikoz artı laktat durumuna ilişkin veriler, iki yönlü bir ANOVA çoklu karşılaştırma testi (***, P < 0.001) kullanılarak yalnızca glikoz içeren kontrol koşuluna karşılık gelen verilerle karşılaştırıldı  . VİDEO S1


                  Bir makrofaj, C. albicans yükünü annenin tomurcuk izine bağlar. Bu 120 saniyelik video, bir BMDM'nin daha sonra yutulan bir anne C. albicans hücresinin tomurcuk izine bağlanmasını gösteriyor . Film S1'i indirin , AVI dosyası, 12.5 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır . VİDEO S2


                  Bir makrofaj, C. albicans yükünü ana hücrenin uzak ucuna bağlar. Bu 33 saniyelik video, yutulmadan önce bir BMDM'nin bir ana C. albicans hücresinin (üst orta) uzak ucuna bağlanmasını gösteriyor . Film S2'yi indirin , AVI dosyası, 11.1 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır .
                  Daha sonra, hedef C. albicans hücresini bağladıktan sonra bir BMDM'nin hedef C. albicans hücresini tamamen yutması için geçen süreyi ölçtük . Laktata maruz kalan C. albicans hücrelerinin fagositozu önemli ölçüde daha uzun sürmüştür (Şekil 2b). Bu, BMDM'nin C. albicans hücresini bir tomurcuk yarası, bir septal bağlantı noktası veya yanal hücre duvarı ile kavrayıp kavramadığı durumdu . Bu, β-1,3-glukan bağlayıcı PRR'lerin kümelenmesinin C. albicans'ın ( 65 , 66 ) verimli fagositozunu teşvik ettiği ve laktat kaynaklı β-1,3-glukan maskelemenin doğuştan gelen tepkileri azalttığı konseptiyle tutarlıydı. C. albicans'a karşı bağışıklık hücreleri .

                  Ana hücreler daha fazla β-glukan maruziyeti gösterir.


                  S. cerevisiae anne ve kızı hücreleri sitokinez sırasında ayrılırken , septal bağlantı parçalanarak kızı serbest bırakır ve annede bir tomurcuk izi bırakır ( 67 ). Bu, septumda β-1,3-glukanı parçalamak için ana hücre değil yavru hücre tarafından Eng1 endoglukanazın asimetrik sentezini içerir ( 67 , 68 ). Sonuç olarak, S. cerevisiae engl mutantları bir hücre ayırma kusuru sergiler ( 68 ) ve bu aynı zamanda C. albicans için de geçerlidir ( 69 ). Bu nedenle, akış sitometrisi ile C. albicans anne ve kızı hücrelerinde β-1,3-glukan maruziyet seviyelerini karşılaştırdık .

                  Fc-dectin-1 ile boyamadan önce, C. albicans SN250 hücreleri ilk önce kalkoflor beyazı (CFW) ile boyandı, yıkandı ve daha sonra eski hücreleri ayırt etmek için CFW olmadan 2.5 saat daha (yaklaşık bir iki katına çıkma süresi) büyütüldü ( anneler; CFW pozitif) daha genç hücrelerden (kızlar: CFW negatif). İlk olarak, bu CFW boyamasının, deneysel koşullarımız altında hücre büyümesine veya β-1,3-glukan boyamasına önemli ölçüde müdahale etmediğini doğrulamak için kontrol deneyleri yapıldı. C. albicans büyümesi, 20 μg/mL CFW'ye kadar olan konsantrasyonlardan önemli ölçüde etkilenmedi (Şekil 3a). Ayrıca, akış sitometrisi, bu kontrol analizinin her aşamasında CFW ile boyanmış ve boyanmamış hücreler arasında β-1,3-glukan maruziyetinde (medyan floresan yoğunluğu [MFI]) önemli bir fark göstermedi (Şekil 3bVe​ve CC).

                  ŞEK. 3
                  Çoğu glukan maruziyeti ana hücrelerle ilişkilidir. Kalkoflor beyazı (CFW) boyama, daha yaşlı ana hücreleri daha genç yavru hücrelerden ayırt etmek için kullanıldı. (a) İlk olarak, CFW'nin büyüme üzerindeki etkisi test edildi. C. albicans SN250 hücreleri, CFW'siz (maya nitrojen bazı [YNB]) veya 10, 15 veya 20 μg/mL CFW ile 5 dakika boyandıktan sonra GYNB üzerinde büyütüldü ve yıkandı ve ardından CFW'siz ortamda büyüme izlendi. 9 saat (b) Deneysel tasarımı gösteren şema. C. albicans SN250 hücreleri, gece boyunca GYNB (1) içinde büyütüldü ve daha sonra yıkandı ve OD 600'de taze GYNB'ye aktarıldı.0,2 (2). Hücreler daha sonra 2,5 saat süreyle büyütüldü ve 5 dakika süreyle 20 μg/mL CFW ile boyandı (3). Hücreler daha sonra 2.5 saat daha büyütüldü (yaklaşık bir ikiye katlama süresi) (4). (c) Bu deneysel tasarım bağlamında CFW boyamasının Fc-dectin-1 ile müteakip boyamayı etkileyip etkilemediğini test etmek için bir kontrol deneyi yapıldı. Her aşamada (1 ila 4 olarak etiketlenmiş), kültürler ikiye bölündü: bir kısım 5 dakika boyunca 20 μg/mL CFW ile boyandı, diğer kısım ise boyanmadı. Her numune GYNB'de belirtildiği gibi büyütüldü, Fc-dektin-1 ile boyandı ve akış sitometrisi ile analiz edildi. (d) C. albicans'ı gösteren mikroskopiden temsili görüntülerAydınlık alan, CFW lekeli (ana hücreler) ve birleştirilmiş görüntülerde (ölçek çubuğu, 5 μm) maya ve tomurcuklanan maya formlarını sunan SN250 vahşi tip suşu. (e) Bu kontrol deneylerinin performansından sonra, panel c için açıklandığı gibi deneyler yapıldı. Daha sonra, C. albicans SN250 hücreleri, CFW boyamalarına göre kapılandı ve CFW-pozitif ve CFW-negatif alt popülasyonlar için β-1,3-glukan maruziyet seviyeleri belirlendi. (f) Her alt popülasyon için üç bağımsız deneyden elde edilen ortalama CFW MFI ve Fc-dectin-1 MFI (standart sapma ile) gösterilmiştir.

                  Yaklaşımı doğruladıktan sonra, akış sitometrisi ile anne ve kızı hücrelerinde β-1,3-glukan maruziyet seviyelerini karşılaştırdık. İlk olarak, hücreler, CFW boyamalarına dayalı olarak daha yaşlı anne ve daha genç yavru hücre popülasyonlarına ayrıldı (Şekil 3d). Bu iki hücre popülasyonu, akış sitometrisi kullanılarak açıkça ayırt edilebilir (Şekil 3e). Daha sonra, bu iki hücre popülasyonu için Fc-dectin-1 boyamasının yoğunluğu belirlendi (MFI) (Şekil 3f). Daha yaşlı ana hücreler, daha genç yavru hücrelere göre önemli ölçüde daha yüksek seviyelerde β-1,3-glukan maruziyeti sergilediler.Şekil 3f), S. cerevisiae için tarif edildiği gibi ( 67 , 68 ), C. albicans'ta sitokinez sırasında yavru hücreler tarafından septal bağlantı noktalarında β-1,3-glukanın asimetrik bozunması ile tutarlı olacak ve artık β-1 bırakacak, 3-glukan, ana hücrelerin tomurcuk izlerinin çevresinde açığa çıkar.

                  Maya hücrelerinde β-1,3-glukan maruziyetinin yüksek çözünürlüklü mikroskopisi.


                  C. albicans hücre duvarının mimarisi, uzun yıllardır incelenmekte olup, son zamanlarda ayrıntılı bir skaler modelin tanımlanmasıyla sonuçlanmıştır ( 39 ). Hücre duvarının dış mannan tabakasının, iç hücre duvarında bulunan β-1,3-glukanın çoğunu maskelediği bilinmektedir ( 39 , – 41 ). Bununla birlikte, bazı β-1,3-glukan, septal bağlantılarda ve tomurcuk yaralarında ve maya ve hif hücrelerinin yanal hücre duvarının yüzeyindeki noktasal özelliklerde açığa çıkar ( 45 , 47 , 48 , 70 , 71 ).). Bununla birlikte, bu β-1,3-glukan maruziyetinin mekansal organizasyonu hakkında çok az şey bilinmektedir. Bu nedenle, C. albicans hücre duvarı yüzeyindeki β-1,3-glukan açığa çıkaran özellikleri, Fc-dectin-1 (β-1,3-glukan maruziyeti için) ile boyanmış glikozla büyütülmüş hücrelerin yüksek çözünürlüklü konfokal mikroskopisi ile karakterize ettik. ) ve konkanavalin A (ConA)-AF647 (mannan için) (Şekil 4a; Video S3 ). Oluşturulan Z yığınları daha sonra Zeiss Zen (mavi sürüm) yazılımı kullanılarak bir 3B model oluşturmak için kullanıldı. Bu, septal bağlantılarla ilişkili açığa çıkan β-1,3-glukanın, bölünen hücrelerin anne-kız boynuna yakın yerleştirilmiş yaklaşık 2 μm çapında kolye benzeri yapılarda organize edildiğini ortaya çıkardı.Şekil 4b). Mannan, kitin ve β-glukan ile üçlü boyama, maruz kalan β-1,3-glukanın bu kolye benzeri yapılarının anne-kız bağlantı noktalarında ve tomurcuk izlerinde bulunduğunu doğruladı.Şekil 4cile​ayak parmağı).e). Bu arada, boyutları yaklaşık 0.1 ila 1 um arasında değişen noktasal odakların, yanal hücre duvarının dış mannan tabakasını geçtiği görüldü (Şekil 1eVe​ve4f4file​toiBen).

                  ŞEKİL 4
                  Tomurcuklanan hücrelerde β-1,3-glukan maruziyetinin doğası. (a) C. albicansvahşi tip (SN250) hücreler, 5 saat boyunca tek başına glikoz (GYNB) üzerinde büyütüldü ve Fc-dektin-1/IgG sekonder antikor-AF488 (β-1,3-glukan maruziyeti için) ve ConA-AF647 (mannan) ile boyandı ve yüksek çözünürlüklü konfokal mikroskopi (ölçek çubuğu, 5 μm) ile incelendi. (b) Bir septal bağlantı noktasında (ölçek çubuğu, 5 μm) β-halkası yapısının (septal bağlantılar/tomurcuk izleri) yakından görünümü. (c ila e) Mannan (kırmızı), kitin (cam göbeği) ve β-glukan (yeşil) için üçlü boyama, lekeli kitinin üst üste binen görüntüleriyle açıkta β-glukan özelliklerini gösterir ve böylece tomurcuk izinde β-glukanın lokalizasyonunu vurgular . (f ila i) Farklı boyutlarda noktalı odakların görüntüleri (ölçek çubuğu, 800 nm). a'dan i'ye kadar olan paneller, üç bağımsız deneyin temsili görüntüleridir; her koşul için en az dokuz görüntü oluşturuldu. VİDEO S3


                  C. albicans hücrelerinde β-glukan açığa çıkaran özelliklerin Airyscan yüksek çözünürlüklü konfokal mikroskopisi . Glikoz içinde büyütülen vahşi tip (SN250) hücreler, septal bağlantılarda/tomurcuk izlerinde ve yanal hücre duvarındaki noktalı odaklarda β-1,3-glukan açığa çıkarır (Şekil 7a). Z yığını düzenekleri kullanılarak oluşturulan yüksek çözünürlüklü konfokal mikroskopi ve 3B modelleme, bu yapıları ortaya çıkardı. Açığa çıkan β-1,3-glukan yeşille gösterilir ve açığa çıkan mannan kırmızıyla gösterilir. Film S3'ü indirin , AVI dosyası, 2.6 MB .

                  ŞEKİL 7
                  PKA, Sin3 ve Mig1/2'nin septal bağlantılarda/tomurcuk izleri ve punktat odaklarda β-1,3-glukan maruziyeti üzerindeki etkisi. PKA, Sin3 veya Mig1/2'yi etkisiz hale getirmenin β-1,3-glukan açığa çıkaran özellikler üzerindeki etkileri, Airyscan kullanılarak konfokal yüksek çözünürlüklü floresan görüntüleme ile incelenmiştir. C. albicans hücreleri, GYNB (Glu) veya laktat (GluLac) içeren GYNB üzerinde 5 saat büyütüldü, sabitlendi ve Fc-dektin-1 (β-1,3-glukan maruziyeti; yeşil) ve ConA ( mannan; kırmızı). (a ve e) WT (SN250); (b ve f) mig1 Δ mig2 Δ mutant; (c ve g) sin3 Δ mutantı; (d ve h) tpk1 Δ tpk2Δ mutant. Ölçek çubuğu 5 μm'yi temsil eder; beyaz oklar septal bağlantıları gösterir. Bunlar, her koşul için en az 9 görüntünün elde edildiği üç bağımsız deneyden elde edilen temsili görüntülerdir.

                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır .
                  PKA kontrolü β-glukan maskelemesinin akış aşağı hedefleri.


                  C. albicans'ta β-1,3-glukanın maskelenmesi PKA tarafından düzenlenir ( 48 ). Bununla birlikte, bu fenotipe aracılık eden PKA yolunun aşağı akış hedefleri bilinmemektedir. Aspergillus nidulans'ta PKA , protein kinaz Stk22 ( C. albicans Sak1'in homologu) yoluyla transkripsiyon faktörü CreA'yı ( C. albicans Migl'in homologu) dolaylı olarak düzenler ( 52 ). C. albicans, bir miktar fonksiyonel fazlalık sergileyen iki Mig1 benzeri gen, MIG1 ve MIG 2 içerir ( 2 içerir ( 50 ). Glikoz varlığında, A. nidulansCreA çekirdekte birikir ve katabolit baskılamasına aracılık etmesi için histon deasetilaz Sin3'ü işe alır ( 53 ). S. cerevisiae'de Sin3 , Migl tarafından transkripsiyonel baskıya aracılık eden ortak baskılayıcılar Tup1 ve Cyc8/Ssn6 ( 54 ) ile etkileşime girer. Anlamlı bir şekilde, C. albicans'ta PKA fosforilasyonunun hedefleri Sin3'ü içerir ( 51 ). Bu gözlemleri bir araya getirerek, Sin3 ve Mig1/2'nin PKA aracılı düzenlemeye katkıda bulunabileceğini düşündük.

                  Sin3 -FLAG2 ile birlikte immüno-çökeltilen C. albicans proteinlerinin alt kümelerini belirleyerek Sin3'ün Mig1 veya Mig2 ile fiziksel olarak etkileşime girip girmediğini test ettik . Beklendiği gibi, S. cerevisiae'deki histon deasetilaz kompleksinin Rpd3 (örneğin, CaRpd3, CaRpd31) gibi diğer bileşenlerinin ortologlarını tekrar üretilebilir şekilde belirledik ( histon deasetilaz kompleksinin Rpd3 (örn. CaRpd3, CaRpd31) ( Tablo S2 . Ancak, ne Mig1 ne de Mig2 tanımlanmadı. TABLO S2


                  Laktat varlığında veya yokluğunda glikoz üzerinde büyütülen Candida albicans hücrelerinde Sin3-FLAG 2 etkileşimli proteinler . Tablo S2'yi indirin , XLSX dosyası, 0.5 MB .
                  telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır..
                  Daha sonra Mig1/2 ve Sin3'ün C. albicans'ta laktat kaynaklı β-1,3-glukan maskeleme üzerindeki etkisini test ettik. . Yabani tip SC5314 hücreleri, glikoz içeren minimal ortamda büyütüldü, 5 saat boyunca %0 veya %2 laktata maruz bırakıldı ve ardından Fc-dektin-1 ile boyandı. β-1,3-glukan maruziyet seviyelerini yansıtan Fc-dektin-1 bağlanması miktarı, akış sitometrisi ile nicelleştirildi (Şekil 5a). Laktatın β-1,3-glukan maruziyeti üzerindeki etkisi daha sonra laktata yanıt olarak MFI'deki kat değişimi belirlenerek hesaplandı (Şekil 5b). Yabani tip C. albicans hücreleri tutarlı bir şekilde laktat kaynaklı β-1,3-glukan maskeleme sergiledi ve tpk1 Δ tpk2 Δ hücreleri, daha önce açıklandığı gibi bu fenotipi kaybetti ( 48 , 49 ). İlginç bir şekilde, Mig1'den yoksun hücreler, önemli ölçüde bozulmuş β-1,3-glukan maskelemesi gösterirken, mig2 Δ hücreler göstermedi (Şekil 5b). Daha önce açıklandığı gibi, Mig1 ve Mig2, kısmi fonksiyonel fazlalık gösterir ( 50 ) ve verilerimiz, Mig2'nin değil Mig1'in β-1,3-glukan maskeleme fenotipine katkıda bulunduğunu gösterir. C. albicans sin3 Δ mutantı, mig1 mutantınınkine zıt fenotip sergiledi : sin3 hücreleri, izojenik vahşi tip kontrollerine kıyasla nispeten güçlü β-1,3-glukan maskelemesi sergiledi (Şekil 5b). Bu nedenle, β-1,3-glukan maskelemesi PKA ve Mig1 tarafından yukarı regüle edilir ve Sin3 tarafından aşağı regüle edilir.

                  ŞEKİL 5
                  PKA kontrolü β-glukan maskelemesinin akış aşağı hedefleri. (a) GYNB (kırmızı) veya laktat (mavi) içeren GYNB'de 5 saat büyütülen ve Fc-dektin-1 ile boyanmış aşağıdaki C. albicans suşlarının akış sitometrisi: WT (mig) (SN250) , mig1 Δ , mig2 Δ , mig1 Δ mig2 Δ, WT (tpk) (SN152HLA), tpk1 Δ tpk2 Δ, WT (sin3) ve sin3Δ suşları. Her koşul altında büyütülen hücreler için MFI'ler, her panelin üst kısmında gösterilir. Bu profiller, üç bağımsız deneyde elde edilenleri temsil eder. (b) GluLac için MFI'nin Glu için MFI'ye oranı olarak hesaplanan β-1,3-glukan maruziyetindeki kat değişiklikleri. Üç bağımsız deneyden elde edilen sonuçların ortalamaları ve standart sapmaları gösterilmektedir. Veriler, Tukey çoklu karşılaştırma testi ile iki yönlü ANOVA kullanılarak analiz edildi (*, P  < 0.05; **, P  < 0.01; ***, P  < 0.001).

                  β-1,3-glukan traşlama enzimlerini kodlayan genlerin ifadesi, PKA, Migl/2 ve Sin3 tarafından modüle edilir.


                  Daha önce, salgılanan majör ekzoglukanaz Xogl'in C. albicans hücre yüzeyinden β-1,3-glukanı tıraş ettiğini bildirmiştik ( 42 ). Ayrıca salgılanan endoglukanaz Eng1 seviyelerinin laktata yanıt olarak düzenlendiğini gösterdik ( 42 ) ve bu endoglukanazın ayrıca C. albicans'ta β-1,3-glukan maskelemesine katkıda bulunduğu gösterildi ( 42 ). İlk önce traşlama enzimlerini kodlayan genlerin ekspresyonunu ters transkriptaz kantitatif PCR (qRT-PCR) ile izledik. PKA, Sin3 ve Mig1/2'nin XOG1 ve ENG1 üzerindeki etkisini araştırdıkglikoz veya glikoz artı laktat üzerinde büyüme sırasında transkript seviyeleri. Önceki çalışma, durağan fazda β-1,3-glukan maruziyetinin azaldığını gösterdi ( 72 ) ve bu nedenle, durağan ve üstel faz hücreleri analizlerimize dahil edildi.

                  Durağan fazlı hücrelerde, Mig1/2 inaktivasyonunun ardından XOG1 ve ENG1 transkript seviyeleri azaldı, bu da bu koşullar altında normal ekspresyon seviyeleri için Mig1 ve Mig2'nin gerekli olduğunu düşündürür (Şekil 6aVe​ve B).B). Bununla birlikte, bu etkiler, laktata maruz kalsalar da kalmasalar da, katlanarak büyüyen hücreler için daha az dramatikti. Sin3 inaktivasyonu, XOG1 ve ENG1 transkript seviyelerini önemli ölçüde etkilemedi , ancak PKA ( tpk1 Δ tpk2 Δ) kaybı, sabit faz hücrelerinde XOG1 transkript seviyelerini düşürdü ve laktat olsun ya da olmasın, üstel faz hücrelerinde XOG1 ve ENG1 seviyelerini arttırdı. (Şekil 6aVe​ve BB).

                  ŞEKİL 6
                  β-1,3-glukan traşlama enzimlerini kodlayan genlerin ifadesi, PKA, Migl/2 ve Sin3 tarafından modüle edilir. (a ve b) ACT1 ve TAF14 dahili kontrollerine göre ölçülen XOG1 (a) ve ENG1 (b) transkript seviyeleri . Aşağıdaki C. albicans suşları, gece boyunca GYNB (gri) üzerinde veya 60 dakika boyunca GYNB (Glu; kırmızı) veya laktat içeren GYNB (GluLac; mavi) üzerinde durağan faza büyütüldü: WTm (SN250), mig1 Δ mig2 Δ mutant , sin3 Δ mutant, WTt (SN152HLA) ve tpk1 Δ tpk2 Δ mutant. (c) C. albicans'ta göreceli Xog1 ve Eng1 seviyeleriLC-MS/MS ile ölçüldüğü şekliyle sekretom. Hücreler, GYNB artı laktat içinde 5 saat büyütüldü. Mutant sekretomdaki hedef proteinin seviyesi, karşılık gelen izojenik ebeveyn suşunun sekretomundaki seviyeye bölünür; suşlar arasında WTm (SN250), migl Δ mig2 Δ mutant, sin3 Δ mutant, WTt (SN152HLA) ve tpk1 Δ tpk2 Δ mutant bulunur. Üç tekrarlı deneyden elde edilen sonuçların ortalamasını temsil eden veriler, Tukey çoklu karşılaştırma testiyle iki yönlü ANOVA kullanılarak analiz edildi (*, P  < 0.05; **, P  < 0.01; ***, P  < 0.001).

                  β-1,3-glukanaz kodlayan transkriptlerin seviyelerindeki bu değişiklikler, β-1,3-glukan maskelemesi üzerindeki PKA, Sin3 ve Mig1/2'nin etkisiyle iyi korelasyon göstermedi (Şekil 5b). Örneğin, PKA'nın etkisizleştirilmesi, yüksek XOG1 mRNA seviyelerine yol açtı (Şekil 6a) ancak laktat kaynaklı β-1,3-glukan maskelemesini azalttı (Şekil 5b). Bu nedenle, mig1 Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ hücrelerinin sekretomlarını, maskeleme etkinleştirildiğinde laktata maruz kalma sırasında izojenik vahşi tip kontrollerininkilerle karşılaştırdık. Salgılanan Xog1 seviyeleri, tpk1 Δ tpk2 Δ hücrelerinde önemli ölçüde azaldı ve sin3 Δ hücrelerinde yükseldi (Şekil 6c; Bu mutasyonların β-1,3-glukan maskelemesi üzerindeki etkileriyle tutarlı olan Tablo S1 (Şekil 5b). Salgılanan Eng1 seviyeleri, mig1 Δ mig2 Δ hücrelerinde azaldı (Şekil 6c), zayıflatılmış β-1,3-glukan maskelemelerine katkıda bulunabilir (Şekil 5b). Bu nedenle, sekretomdaki Xog1 ve Eng1 seviyeleri, β-1,3-glukan maskelemedeki rolleri ile koreleydi, ancak transkript seviyeleri olmadı (Şekil 6aVe​ve B).B). Bu nedenle, sekretomdaki Xog1 ve Eng1 seviyeleri, transkripsiyon sonrası düzenlenmiş gibi görünmektedir. TABLO S1


                  Laktat varlığında veya yokluğunda glikoz üzerinde gelişen Candida albicans suşlarının sekretomları . WTm (SN250), migl Δ mig2 Δ ve sin3 Δ suşları için ebeveyn kontrolüydü ve WTt (SN152HLA), tpk1 Δ tpk2 Δ suşu için kontroldü . Tablo S1, XLSX dosyasını indirin , 0.8 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır .
                  PKA, Sin3 ve Mig1/2'nin hücre duvarındaki β-1,3-glukan açığa çıkaran özellikler üzerindeki etkisi.


                  Daha sonra glikoz veya glikoz artı laktat ile desteklenmiş ortamda büyümeden sonra konfokal yüksek çözünürlüklü floresan mikroskobu ile PKA, Sin3 ve Mig1/2'nin C. albicans hücreleri üzerindeki β-1,3-glukan maruziyetinin doğası üzerindeki etkisini inceledik (Şekil 7). Daha önce gözlemlendiği gibi, β-1,3-glukan, glikozla büyütülmüş vahşi tip hücrelerde β-halkası kolye benzeri yapılarda açığa çıktı (Şekil 4b), ancak bu hücreler laktata maruz kaldıklarında, bu β-1,3-glukan yapısından yoksundular (Şekil 7aVe​ve)e). İlginç bir şekilde, laktat bulunup bulunmadığına bakılmaksızın, mig1 Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ mutantlarının tümü, septal bağlantı noktalarında kontrol vahşi tiptekilere kıyasla düşük seviyelerde β-1,3-glukan maruziyeti sergiledi. C. albicans hücreleri tek başına glikoz üzerinde büyümüştür (Şekil 7, oklar; Videolar S4 - S6 ). Laktat varlığı, vahşi tip ve migl/2 A hücrelerinin büyümesini azalttı, ancak sin3 A ve tpk1/2 A mutantlarının büyümesini azaltmadı ( Şekil S1a ). Ayrıca sin3 Δ mutantı, test edilen tüm koşullar altında filamentler oluşturmuştur (Şekil 7cVe​ve G).G). Bu gözlemler, büyüme ( 72 ) ve filamentleşmenin β-1,3-glukan maruziyetini etkilediği fikriyle tutarlıydı . Ek olarak, tpk1 Δ tpk2 Δ, sin3 Δ ve mig1 Δ mig2 Δ mutasyonları, C. albicans'ın , β-1'deki değişikliklerle birlikte kalkoflor beyazı ve Kongo kırmızısı ( Şekil S1b ) hücre duvarı stresörlerine direncini etkiledi . 3-glukan maruziyeti, bu mutasyonların hücre duvarı işlevselliğini etkilediği görüşüyle ​​tutarlıydı ( 50 , 51 , 73 ). VİDEO S4


                  Mig1 Δ mig2 Δ hücreleri üzerinde maruz kalan β-glukanın Airyscan yüksek çözünürlüklü konfokal mikroskopisi . C. albicans migl Δ mig2 Δ hücreleri, glikoz artı laktat içinde büyütüldü ve yüksek çözünürlüklü floresan mikroskobu ve 3D modellemeye tabi tutuldu. Bu mig1 Δ mig2 Δ hücreleri, septal bağlantılarda ve tomurcuk izlerinde azalmış β-1,3-glukan maruziyeti ve azalmış mannan boyaması gösterir. Açığa çıkan β-glukan yeşille gösterilir ve açığa çıkan mannan kırmızıyla gösterilir. Film S4'ü indirin , AVI dosyası, 2.2 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır . VİDEO S5


                  Sin3 Δ hücrelerde maruz kalan β-1,3-glukanın Airyscan yüksek çözünürlüklü konfokal mikroskopisi . C. albicans sin3 Δ hücreleri, glikoz artı laktat içinde büyümüş filamentler oluşturur ve septal bağlantılarda ve tomurcuk izlerinde sınırlı β-1,3-glukan maruziyeti ve azalmış mannan lekesi gösterir. Açığa çıkan β-glukan yeşille gösterilir ve açığa çıkan mannan kırmızıyla gösterilir. Film S5'i indirin , AVI dosyası, 1.6 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır . VİDEO S6


                  tpk1 Δ tpk2 Δ hücrelerde açığa çıkan β-1,3-glukanın Airyscan yüksek çözünürlüklü konfokal mikroskopisi . C. albicans tpk1 Δ tpk2 Δ glikoz artı laktat içinde büyütülen hücreler, septal bağlantılarda ve tomurcuk izlerinde minimum β-1,3-glukan maruziyeti gösterir, ancak punktat odaklarda β-1,3-glukan açığa çıkarır. Açığa çıkan β-glukan yeşille gösterilir ve açığa çıkan mannan kırmızıyla gösterilir. Film S6'yı indirin , AVI dosyası, 1.8 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır . ŞEKİL S1


                  5 saat sonra glukozla büyütülen ve glukozla laktatla büyütülen hücreler. Suşlar, GYNB ortamında aşılandı ve 30°C'de 16 saat büyütüldü. Ertesi gün hücreler iki kez suyla yıkandı, 0.2 OD/mL'de aşılandı ve 5 saat büyümeye bırakıldı. (a) Glikoz ve glikoz-laktatla yetiştirilen hücreler, OD 600nm ile ölçüldü. (b) Suşlar, 30°C'de 16 saat tam ortam içinde büyütüldü ve ardından iki kez yıkandı ve bırakma noktası aşılaması yapılmadan önce 1.0 OD/mL'ye seyreltildi. 1.0, 0.1, 0.001, 0.001 ve 0.0001 OD/mL olmak üzere bir seri seyreltme uygulandı ve bu seyreltmeler, 96 oyuklu bir kopya plakalayıcı kullanılarak aşılandı. Plakalar, 3 gün boyunca 30°C'de büyütüldü. Kullanılan hücre duvarı stres ajanları, CFW (kalkoflor beyazı) ve CR (Kongo kırmızısı), mililitre başına mikrogram olarak temsil edilen artan konsantrasyonlarda gösterilmiştir. Veriler, üç bağımsız deneyin ortalamasıdır ve kopyalar siyah daireler (glikoz) ve siyah kareler (glikoz artı laktat) olarak sunulur. Standart sapmalar, üç biyolojik kopyadan elde edilen sonuçların ortalamasını temsil eder. *, P  < 0.05; **, P  < 0.01; ***, P < 0,001; her koşul için bir referans olarak WT'yi (izojenik arka plan) kullanan iki yönlü ANOVA çoklu karşılaştırma testi. ŞEKİL S1'i indirin , PDF dosyası, 1,5 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır .
                  Maya ve filamentli C. albicans hücrelerinde β-1,3-Glukana maruz kalma.


                  Daha önce, C. albicans'ın maya formunun büyümesi sırasında öncelikle laktat kaynaklı β-1,3-glukan maskelemesine odaklanmıştık ( 43 , 74 ). Bununla birlikte, β-1,3-glukana maruz kalma seviyeleri, büyüme sırasında ve maya-hifa morfogenezi sırasında değişir ( 72 ). Bu nedenle, vahşi tip ve mutant hücre popülasyonlarında maya ve filamentli hücrelerde β-1,3-glukan maruziyetini ölçmek için görüntüleme akış sitometrisi kullandık.

                  İlk olarak, C. albicans vahşi tip hücreler, glikoz veya glikoz artı laktat içeren minimal ortam üzerinde büyütüldü, Fc-dektin-1 ile boyandı ve tomurcuklanmamış maya hücreleri, tomurcuklanan mayalar, psödohifa ve hücre agregatları için kapılandı (Şekil 8aile​çok).C). Her iki büyüme koşulunda da maya hücrelerinin baskınlığı vardı, ancak laktat varlığında psödohif hücrelerinin oranı arttı.Şekil 8d). Görüntüler, psödohif ve hücre agregatlarının, tomurcuklanmamış maya hücrelerine göre daha yüksek seviyelerde β-1,3-glukan maruziyeti gösterdiğini göstermektedir.Şekil 8c). Bu izlenim, bu hücre popülasyonları için MFI'ler belirlenerek doğrulandı (Şekil 8e). Veriler ayrıca, laktata maruz kalmanın, gelişim aşamasına bağlı olarak β-1,3-glukan maruziyet seviyelerini farklı düzeylerde modüle ettiğini de ortaya koydu. Örneğin, maya hücreleri (tomurcuklu ve tomurcuksuz) ve psödohif, hücre kümelerinden daha güçlü laktat kaynaklı maskeleme sergiledi (Şekil 8file​toi).Ben). Bununla birlikte, hücre kümeleri, toplam popülasyonun küçük bir bölümünü temsil ediyordu (Şekil 8d).

                  ŞEKİL 8
                  Maya ve psödohif hücrelerinde β-1,3-glukan maruziyetinin düzenlenmesi. C. albicans hücreleri, laktat içeren GYNB veya GYNB içinde 5 saat büyütüldü ve Fc-dektin-1 ile boyandı. Bu popülasyonlardaki maya ve psödohif hücrelerinin oranları ve bunların β-1,3-glukan maruziyet seviyeleri daha sonra görüntüleme akış sitometrisi ile analiz edildi. Görüntüleme ile gözlemlenen hücre morfolojisine ve hücrelerin sitometri ile dağılımına dayanarak, hücre popülasyonları tomurcuklanmamış maya hücrelerine, tomurcuklanan mayaya, psödohiflere ve ipliksi hücrelere yerleştirildi. (a) GYNB'de (yalnızca glikoz) büyütülen hücrelerin kapılanması. (b) Laktat içeren GYNB üzerinde büyütülen hücrelerin kapılanması. (c) C. albicans'ın temsili görüntüleriParlak alan, flüoresan mikrograf ve birleştirilmiş görüntüler dahil olmak üzere bu alt popülasyonlardaki SN250 hücreleri. (d) WTm (SN250), mig1 Δ dahil olmak üzere GYNB (G) veya laktat (L) içeren GYNB üzerinde 5 saat boyunca büyütülen farklı C. albicans suşlarında gözlenen tomurcuklanmamış maya hücrelerinin, tomurcuklanan maya hücrelerinin, psödohiflerin ve filamentli hücrelerin yüzdeleri , mig2 Δ, mig1 Δ mig2 Δ, sin3 Δ, WTt (SN152HLA) ve tpk1 Δ tpk2Δ suşları. (e) Panel d'de gösterilen her bir alt popülasyon tarafından görüntülenen β-1,3-glukan maruziyeti (MFI) seviyeleri. (f ila i) Panel e'de gösterilen her bir alt popülasyon için β-1,3-glukan maruziyetindeki kat değişimi, GluLac MFI'nin Glu MFI'ye oranı olarak hesaplanmıştır. Üç bağımsız deneyden elde edilen sonuçların ortalamaları ve standart sapmaları gösterilmektedir. d'den f'ye kadar olan panellerdeki veriler, üç bağımsız deneyden elde edilen sonuçların ortalamasını temsil eder ve Tukey çoklu karşılaştırma testiyle iki yönlü ANOVA kullanılarak analiz edildi (*, P  < 0.05; **, P  < 0.01; ***, P  < 0.001 ).

                  Daha sonra, görüntüleme akış sitometrisi kullanarak PKA, Sin3 ve Mig1/2'nin bu hücre türleri için β-1,3-glukan maruz kalma seviyeleri üzerindeki etkisini test ettik. Yabani tip, migl Δ, mig2 Δ, migl Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ hücreleri, laktatlı veya laktatsız, glikoz içeren minimal ortamda büyütüldü ve Fc-dektin-1 ile boyandı. Bir kez daha, bu popülasyonlar, tomurcuklanmamış maya hücreleri, tomurcuklanan mayalar, psödohifler ve hücre agregatları için kontrol edildi ve her bir alt popülasyondaki β-1,3-glukan boyaması ölçüldü (MFI). tpk1 Δ tpk2 Δ mutantı, beklendiği gibi daha az psödohif ve hücre kümeleri oluşturdu ( 73, 75 ) ve zayıflatılmış laktat kaynaklı β-1,3-glukan maskelemesi (Şekil 8file​toi),Ben), tahmin edildiği gibi ( 47 , 48 ). Sin3 inaktivasyonu, tomurcuklanan maya hücrelerinde β-1,3-glukan maskelemesini arttırdı (Şekil 8g), daha önce açıklandığı gibi (Şekil 5b). Bu artan maskeleme ayrıca sin3 Δ hücreleri tarafından artan psödohifa oluşumu ile de ilişkilidir (Şekil 8d). Bu arada, mig1 Δ mig2 Δ hücreleri, laktat varlığında azalmış psödohifa oluşumu, ancak tomurcuklanan mayalarda artmış β-1,3-glukan maskelemesi sergiledi (Şekil 8dVe​ve)e). Bu gözlemler, mig1 Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ mutasyonlarının , kısmen büyüme ve gelişme üzerindeki etkileri yoluyla C. albicans hücre popülasyonlarının β-1,3-glukan maruziyetini etkilediği fikriyle tutarlıdır .

                  PKA, Sin3 ve Mig1/2'nin C. albicans virülansı üzerindeki etkisi .


                  Daha önce laktatın fare ve insan hücrelerinde anti- Candida bağışıklık yanıtlarını zayıflattığını ve bir sistemik kandidiyazis fare modelinde C. albicans'ın virülansını artırdığını göstermiştik ( 76 , 77 ). Ayrıca bir β-glukanaz inhibitörünün C. albicans'ın virülansını azalttığını da gösterdik ( 43 ). PKA, Sin3 ve Mig1/2, β-1,3-glukan maskelemesini etkiler (Şekil 5b) ve bu nedenle, bu düzenleyicileri devre dışı bırakmanın laktatın C. albicans virülansı üzerindeki etkisini etkileyip etkilemediğini test ettik . Bunu başarmak için, sistemik kandidozun Galleria mellonella modelinde glikoz veya glikoz artı laktat üzerinde ön büyümeden sonra C. albicans mig1 Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ hücrelerinin virülansını karşılaştırdık ( 78 , 79 ).

                  Beklenmedik bir şekilde laktata maruz kalma, Galleria modelinde vahşi tip C. albicans hücrelerinin virülansını arttırmadı (Şekil 9a). İki ilgili vahşi tip suş karşılaştırıldı: C. albicans SN250 (WTm) ve SN152HLA (WTt). Glikoz artı laktata önceden adapte edilmiş mantar hücreleri ve bunların glikoz kontrolleri için larva sağkalımında önemli bir fark gözlenmedi. tpk1 Δ tpk2 Δ, sin3 Δ ve mig1 Δ mig2 Δ mutantları daha sonra ilgili vahşi tip kontrolleriyle karşılaştırıldı (Şekil 9bile​tod).D). Üç mutantın tümü, glikoz artı laktat üzerinde önceden büyütüldüklerinde, vahşi tip kontrollerinden önemli ölçüde daha az öldürücüydü. Ayrıca, her üç mutantın da laktat mevcudiyetinde önceden uyarlandıklarında karşılık gelen sadece glukoz içeren kontrollere kıyasla daha düşük larva öldürme oranları sergiledikleri şeklinde ilginç bir eğilim gözlendi, ancak bu fark sadece sin3 Δ hücreleri için istatistiksel olarak anlamlıydı (Şekil 9bile​tod).D). Bu veriler , hücreler laktata maruz kaldığında Tpk1/2, Sin3 ve Mig1/2'nin C. albicans'ın virülansına katkıda bulunduğu fikriyle tutarlıdır . β-1,3-Glukan maskelemesi, bu gelişmiş virülansa katkıda bulunabilir. Bununla birlikte, sin3 Δ hücreler laktata bağlı β-1,3-glukan maskelemesi gösterir (Şekil 5b) ve yine de laktata maruz kaldıktan sonra virülansları azaldı (Şekil 9c).

                  ŞEKİL 9
                  PKA, Sin3 ve Mig1/2, C. albicans'ın laktatla güçlendirilmiş virülansına katkıda bulunur . C. albicans suşları, GYNB (Glu) veya laktat içeren GYNB (GluLac) üzerinde büyütüldü ve daha sonra Galleria modeli kullanılarak virülansları incelendi . C. albicans hücreleri toplandı, yıkandı ve 5 x 10⁶'da yeniden süspanse edildiPBS içinde CFU/mL ve ardından bu hücre süspansiyonlarının 50 uL hacimleri larvaları enjekte etmek için kullanıldı. Kontrol larvaları tek başına PBS aldı. Larvaların hayatta kalması 10 gün boyunca 37°C'de karanlıkta izlendi, ölüm ve melanin oluşumu günlük olarak gözlendi ve ölü böcekler uzaklaştırıldı. Her koşul için 15 larva kullanan üç bağımsız deneyden elde edilen temsili grafikler gösterilmektedir. (a) Vahşi tip suşlar WTm (SN250) ve WTt (SN152HLA): WTm Glu, kırmızı; WTm GluLac, mavi; WTt Glu, sarı; WTt GluLac, gri. (b) Vahşi tip WTm (SN250) ve mig1 Δ mig2 Δ mutant: WTm Glu, kırmızı; WTm GluLac, mavi; mutant Glu, yeşil; mutant GluLac, mor. (c) Yabani tip WTm (SN250) ve sin3Δ mutant: WTm Glu, kırmızı; WTm GluLac, mavi; mutant Glu, yeşil; mutant GluLac, mor. (d) Yabani tip WTt (SN152HLA) ve tpk1 Δ tpk2 Δ mutant: WTt Glu, kırmızı; WTt GluLac, mavi; mutant Glu, yeşil; mutant GluLac, mor. Hayatta kalma eğrilerinin karşılaştırmaları, mutantların ilgili ebeveyn suşlarına karşı karşılaştırılmasıyla log rank (Mantel-Cox) testi kullanılarak yapıldı: yani, migl Δ mig2 Δ ve sin3 Δ mutantlarına karşı WTm (SN250) ve tpk1 Δ'ya karşı WTt (SN152HLA) tpk2 Δ mutantları (*, P  < 0.05; **, P  < 0.01; ***, P  < 0.001).

                  Git: TARTIŞMA


                  C. albicans virülansı, konakçının bağışıklık durumunu ve uygunluğunu, rekabetçi bir mikrobiyotanın varlığını ve doğrudan mantara atfedilebilen özellikleri içeren çok faktörlü bir fenotiptir ( 80 , – 83 ). Mantar virülans faktörlerinin ve uygunluk özelliklerinin bir kombinasyonu, hastalığın ciddiyetini artırır ve bunlar, konakçı parçalayıcı hidrolazların ve gözenek oluşturucu toksin kandidalisin salgılanmasının yanı sıra maya-hifa morfolojik geçişlerini ve yerel çevresel zorluklara güçlü adaptif tepkileri içerir. Kolonize olan mantar hücrelerinin tanınmasının ardından konakçı, mantar büyümesini sınırlamak ve istilacı mantarı temizlemek için tasarlanmış yerel antifungal tepkileri aktive ederek yanıt verir ( 5 , 9) ., 10 , 84 , 85 ). Bununla birlikte, C. albicans , konakçı tarafından uygulanan bu zorluklara karşı yanıtlar geliştirmiştir; bunlardan biri, doğuştan gelen antifungal bağışıklık tepkilerini zayıflatan hücre yüzeyinde β-1,3-glukanın maskelenmesidir ( 43 , 47 , – 49 ).

                  C. albicans hücre duvarındaki çoğu β-1,3-glukan, mannan fibrillerinin dış tabakasının altına gömülüdür ( 38 , 39 , 41 ). O halde bazı β-1,3-glukan hücre yüzeyinde nasıl açığa çıkar? Verilerimiz, β-1,3-glukanın iki ana özellik tipinde açığa çıktığını doğrulamaktadır: (i) septal bağlantı noktalarında ve tomurcuk yaralarında daha büyük özellikler (Şekil 4b) ve (ii) yanal hücre duvarında daha küçük noktasal odaklar (Şekil 4cile​ayak parmağı)e) ( 48 , 70 , 71 ). Anne ve yavru hücreler arasındaki septal bağlantının çevresinde açıkta kalan bir β-1,3-glukan kolyesi bulunur.Şekil 4b; ek materyaldeki Video S3'e bakın ). Sitokinezi takiben, β-1,3-glukan ana hücrede ortaya çıkan tomurcuk skarında açığa çıkar, ancak kızı değil (Şek. 3), bu, yavru hücre tarafından sentezlenen Eng1 yoluyla septumda β-1,3-glukanın asimetrik bozunması ile tutarlıdır ( 67 , 68 ). Bunun bir sonucu olarak yavru hücreler, doğuştan gelen bağışıklık hücreleri tarafından ana hücrelere göre daha az görünür hale gelirler.Şekil 8e, maya hücrelerinin β-glukan MFI'sini tomurcuklanan maya hücrelerininkiyle karşılaştırın). Bununla birlikte, makrofajlar sıklıkla fagositoz sırasında tomurcuk izini hedef aldığından (İncir. 2), tomurcuk izlerinde açığa çıkan β-1,3-glukanın laktata bağlı tıraş edilmesi (Şekil 1) muhtemelen ana hücrelerin antifungal bağışıklık tanımaya karşı savunmasızlığını azaltacaktır ( 43 ).

                  Yanal hücre duvarında açığa çıkan β-1,3-glukanın noktalı odaklarının ultrastrüktürel doğası belirsizliğini koruyor. Örneğin, kriyo-elektron mikroskobu yoluyla daha yüksek çözünürlüklü görüntüleme, deneylerimizde mikroskobun çözünürlük sınırının altında kalan bu noktasal odakların yapısını çözmek için gereklidir. Bu odaklar, duvarın dış mannan tabakasındaki kusurlardan basitçe ortaya çıkabilir. Kuşkusuz, bu mannan tabakasının genetik, farmakolojik veya immünolojik bozulması, β-1,3-glukan maruziyetine yol açabilir ( 38 , 39 , 41 , 71 , 86 , – 89 ). Bununla birlikte, bu noktalı yapıların varlığı (Şekil 4file​toi)Ben) hücre dışı veziküller gibi parçacıkların hücre duvarından çıkışı ile de tutarlı olabilir. C. albicans'ın hücre dışı veziküller salgıladığı bilinmektedir ( 90 , 91 ), hücre duvarı elastiktir ( 92 ) ve 20 ila 60 nm çapındaki parçacıkların hücre duvarını geçtiği gösterilmiştir ( 93 ). Hücre duvarını geçme eyleminde, hücre dışı veziküllerin iç duvardan bir miktar β-1,3-glukan sürüklediği ve noktasal odaklarda açığa çıkmasına yol açtığı düşünülebilir. Laktata maruz kalma, bu noktalı odakların sayısını azaltır (Şekil 1b). Buna laktat kaynaklı β-1,3-glukan tıraşı ( 42 , 43 ), laktat üzerindeki büyümenin aracılık ettiği hücre duvarı esnekliğindeki değişiklikler ( 92 , 94 ) veya bu mekanizmaların bir kombinasyonu aracılık edebilir .

                  C. albicans'ta laktat , hipoksi veya demir sınırlamasına yanıt olarak β-1,3-glukan maskelemesi PKA sinyaline bağlıdır ( 47 , 48 ). S. cerevisiae ve A. nidulans'ta , merkezi düzenleyici protein kinaz, PKA, aşağı akış hedefleri, yani histon deasetilaz Sin3 ve transkripsiyon baskılayıcı Migl ( 52 , 53 , 95 , 96 ) yoluyla katabolit baskısına aracılık eder. Sin3, C. albicans'ta PKA fosforilasyonunun bir hedefidir ( 51 ). Bu nedenle, bir PKA-Sin3-Mig1/2 yolunun C. albicans'ta β-1,3-glukan maruziyetini düzenleyebileceğini düşündük.. C. albicans mig1 Δ mig2 Δ, sin3 Δ ve tpk1 Δ tpk2 Δ hücreleri için gözlemlediğimiz bazı fenotipler bu çalışma hipoteziyle tutarlıyken, diğerleri değildi. Örneğin, sekretomdaki Xog1 seviyeleri sin3Δ hücrelerinde yükselmiştir (Şekil 6c), sin3Δ hücre yüzeyinde azaltılmış β-glukan maruziyeti ile tutarlı (Şekil 7). Bununla birlikte, PKA, Sin3 ve Mig1/2'nin inaktivasyonu, XOG1 ve ENG1 transkript seviyeleri üzerinde farklı etkilere sahipti (Şekil 6aVe​ve B),B), bu β-1,3-glukanazların sekretomdaki seviyeleri (Şekil 6c) ve laktat kaynaklı β-1,3-glukan maskeleme (Şekil 5b). Ayrıca, Sin3-FLAG 2 ( Tablo S2 ) ile birlikte immüno-çökeltilen proteinleri tanımlamak için proteomik yaptığımızda Sin3 ile Migl veya Mig2 arasında fiziksel bir etkileşime dair hiçbir kanıt bulamadık . Bu nedenle, verilerimiz PKA, Sin3 ve Mig1/2'nin sekretom ve β-1,3-glukan traşında Xog1 ve Eng1 seviyelerini etkilediğini gösterirken, verilerimiz basit bir lineer PKA-Sin3-Mig1'in varlığıyla tutarlı değildir. /2 bu etkilere aracılık eden yol. Bunun yerine Sin3, Xog1'i düzenliyor gibi görünürken Eng1, Mig1/2 (Şekil 6aVe​ve BB).

                  β-1,3-glukan maskeleme, C. albicans - in vivo konakçı etkileşimlerini etkiler mi ? Bu etkileşimlerin karmaşıklığına rağmen ( 83 ), durum böyle görünüyor. Azalan β-1,3-glukan maruziyeti, gastrointestinal sistemin artan mantar kolonizasyonu ( 35 ) ve deri altı apselerde artan mantar yükleri ( 97 ) ile ilişkilidir . Galleria'daki tpk1 Δ tpk2 Δ, sin3 Δ ve mig1 Δ mig2 Δ mutantlarının davranışları , yayılmış kandidiyazis sırasında laktata maruz kalmanın C. albicans'ın virülansını etkilediğini doğrulamaktadır (Şekil 9) ve bu, laktatın farelerde sistemik kandidiyazı teşvik ettiği gözlemiyle yankılanıyor ( 77 ). Bununla birlikte, yukarıda bahsedildiği gibi, örneğin maya-hifa morfojenezi gibi ek faktörler mantar virülansına katkıda bulunur. Laktata maruz kalma, stres ve ilaç direnci gibi ek virülansla ilgili fenotipleri etkiler ( 76 , 77 , 92 , 98 ). Ayrıca, düzenleyiciler PKA (Tpk1/2) ve Mig1/2 (ve şüphesiz Sin3) , C. albicans'ta çeşitli roller üstlenirler . PKA büyümeyi, stres direncini, morfogenezi ve kandidalizin üretimini düzenler ( 73 , 75 , 99 , – 101) yanı sıra sekretomdaki β-1,3-glukanaz seviyeleri (Şekil 6c) ve β-1,3-glukan maskeleme (Şekil 5b). Mig1 ve Mig2, Eng1 seviyelerine ek olarak hifal gelişimini ve biyofilm oluşumunu etkiler ve karbon metabolizmasını düzenler ( 50 ).Şekil 6a) ve β-1,3-glukan maskeleme (Şekil 5b). Sin3 hücre morfolojisini etkiler (Şekil 7c) ve ayrıca Xog1 seviyeleri (Şekil 6c) ve β-1,3-glukan maruziyeti (Şekil 5b). Bunun da ötesinde, konakla ilgili çeşitli sinyaller, β-1,3-glukan maruziyetinde değişiklikleri tetikler ( 44 , – 49 ). Bu nedenle, β-1,3-glukan maskeleme ve virülans arasındaki ilişkinin karmaşık olması şaşırtıcı değildir. Bununla birlikte, laktata maruz kalmanın tpk1 Δ tpk2 Δ, sin3 Δ ve mig1 Δ mig2 Δ hücrelerinin virülansını azaltma eğiliminde olması dikkat çekicidir (Şekil 9). Bu mutasyonların laktat kaynaklı β-1,3-glukan maskeleme üzerindeki etkileri ile birlikte ele alındığında (Şekil 5) ve doğuştan gelen bağışıklık hücresinin β-1,3-glukan açığa çıkaran özelliklere saldırma eğilimi (İncir. 2), bu, β-1,3-glukan maskelemesinin , en azından bir omurgasız modelinde, sistemik enfeksiyon sırasında C. albicans'ın uygunluğuna katkıda bulunduğu fikriyle tutarlıdır .

                  Özetlemek gerekirse, C. albicans'ta büyük bir PAMP'ye maruz kalmanın doğası ve düzenlenmesi ve bunun doğuştan gelen bağışıklık hücreleri ve enfeksiyon tarafından tanınmayı nasıl etkilediği hakkında yeni bilgiler sağlıyoruz .

                  Git: MALZEMELER VE YÖNTEMLER


                  Suşlar ve kültür koşulları.


                  C. albicans suşları ( ek materyaldeki Tablo S3'e bakın) , tek bir taze koloniden GYNB'ye (%2 glukoz artı amino asit içermeyen %0.67 maya nitrojen bazı, uygun takviyeleri içerir) ( 102 ) aşılandı ve 16 saat boyunca gece boyunca büyütüldü 30°C ve 200 rpm'de. Hücreler daha sonra 3,000 rpm'de santrifüjleme yoluyla toplandı, iki kez sterilize su ile yıkandı ve 600 nm'de (OD6oo ) 0.2'lik bir optik yoğunluğa kadar %2 (hacim/hacim) dl -laktat sodyum içeren taze GYNB veya GYNB'ye aşılandı. Hücreler daha sonra 5 saat büyütüldü ve ardından 50 mM timerosal (Sigma-Aldrich, Dorset, UK) ile sabitlendi. TABLO S3


                  Bu çalışmada kullanılan Candida albicans suşları. Tablo S3'ü indirin , PDF dosyası, 0.1 MB .
                  Telif hakkı © 2022 de Assis ve diğerleri.
                  Bu içerik , Creative Commons Atıf 4.0 Uluslararası lisansı koşulları altında dağıtılmaktadır .
                  Protein ekstraksiyonu ve immünopresipitasyon.


                  Anti-FLAG M2 manyetik boncuklar ve GFP Seçici (Nanotag) kullanılarak protein ekstraksiyonları, protein tahlilleri ve immünopresipitasyonlar daha önce açıklandığı gibi yapıldı ( 59 ).

                  Akış sitometrisi.


                  C. albicans hücrelerinde β-Glukana maruz kalma , daha önce açıklandığı gibi akış sitometrisi ile ölçüldü ( 48 , 49 ). Kısaca, üstel hücreler, belirtilen koşullar altında 5 saat süreyle inkübe edildi ve ardından 50 mM timerosal (Sigma-Aldrich, Dorset, UK) ile sabitlendi. Hücreler daha sonra Alexa Fluor 488'e (Invitrogen) konjüge edilmiş Fc-dectin-1 ve anti-insan IgG ile boyandı ve bir Attune NxT akış sitometresi veya bir Amnis ImageStream Mk II görüntüleme akış sitometresi kullanılarak 10.000 olayın floresansı elde edildi. Görüntüleme akış sitometrisi, 1 x 10⁶ konsantrasyonlarda 200 uL örneklerle, 40x'lik bir büyütme ve genişletilmiş alan derinliğinde bir ImageStream kullanılarak gerçekleştirildi.floresanla aktive edilen hücre sıralama (FACS) tamponunda (%1 ısıyla inaktive edilmiş fetal sığır serumu [FBS] ve 0,5 mM EDTA içeren fosfat tamponlu salin [PBS]) hücre/mL). Medyan floresan yoğunlukları (MFI'ler), FlowJo v.10 yazılımı kullanılarak belirlendi. Her sitometri grafiği, en az üç bağımsız biyolojik deneyi temsil eder.

                  Bazı deneyler için, C. albicans hücreleri, ana hücreleri kızlarından ayırt etmek için kalkoflor beyazı (CFW) ile önceden boyandı. Bunu başarmak için, C. albicans SN250 gece boyunca 30°C'de GYNB içinde büyütüldü, 3 kez deiyonize suda yıkandı, OD 600 0.2'de taze GYNB'ye aşılandı ve 30°C'de 2.5 saat büyütüldü. Bu hücreler daha sonra 20 ug/mL CFW ile 5 dakika süreyle boyandı ve ardından üç kez deiyonize su ile yıkandı ve hücreler daha sonra 30°C'de 2.5 saat daha büyütüldü. Kontrol, boyanmamış hücreler, bir OD 600'de taze GYNB'ye aşılandı0.2 ve bu kültürler, 30°C'de 5 saat büyütüldü, 2.5 ve 5 saatte boyanmamış örnekler toplanarak β-glukan seviyeleri kontrol edildi. Son olarak hücreler (boyalı ve lekesiz) toplandı, 50 mM timerosal ile sabitlendi, Fc-dektin-1 (yukarıda) ile boyandı ve bir Attune NxT kullanılarak akış sitometrisi ile analiz edildi.

                  qRT-PCR.


                  RNA, üreticinin talimatlarına göre RNeasy bitki mini kitleri (Qiagen, Manchester, UK) kullanılarak sıvı nitrojen altında öğütülmüş hücrelerden hazırlandı. cDNA, üreticinin talimatlarına göre ImProm-II ters transkriptaz kiti (Promega, Southampton, UK) kullanılarak 2 ug RNA'dan sentezlendi. QRT-PCR için, her bir SYBR yeşil reaksiyonu için 1 uL cDNA kullanıldı (SYBR yeşil PCR ana karışımı: Qiagen, Manchester, BK). Transkript seviyeleri, dahili ACT1 ve TAF14 mRNA kontrollerine karşı Bio-Rad CFX96 yazılımı kullanılarak normalleştirildi.

                  Proteomik.


                  Sekretomu incelemek için, %2 laktat içeren GYNB veya GYNB içinde 5 saat büyütülen C. albicans hücreleri, santrifüjleme (20°C'de 5 dakika için 3.000 rpm) ile toplandı, 100 mL kültür süpernatanı, 4°C'de 200 uL'ye kadar konsantre edildi . Amicon Ultra 15 ila 10.000 nominal moleküler ağırlık sınırı (NMWL) filtreleri (Sigma-Aldrich, Gillingham, UK) kullanılarak °C ve numuneler sıvı nitrojen kullanılarak donduruldu. Numuneler daha sonra, tripsin sindiriminden önce dondurularak kurutuldu.

                  Sin3- FLAG2 etkileşimli proteinleri tanımlamak için C. albicans Ca1428 hücreleri ( Tablo S1 ), laktat içeren GYNB veya GYNB içinde 5 saat büyütüldü, protein özleri hazırlandı ve yukarıda tarif edildiği gibi immünopresipitasyonlar yapıldı. Bu immüno-çökeltilmiş proteinler daha sonra tripsin sindirimine tabi tutuldu.

                  Tripsin sindirimleri, numunelerin 93 μL 50 mM amonyum bikarbonat içinde yeniden süspanse edilmesiyle gerçekleştirildi, 1 μL 0.5 M ditiyotreitol (DTT) eklendi ve örnekler 56°C'de 20 dakika inkübe edildi. Daha sonra 2,7 μL taze 0,55 M iyodoasetamid ilave edildi ve numuneler oda sıcaklığında 15 dakika karanlıkta inkübe edildi. Bu indirgeme ve alkilasyon adımlarından sonra 1 μL ProteaseMAX yüzey aktif madde (V2071; Promega, Southampton, UK) ve 1 μL tripsin altın, kütle spektrometri derecesi (Promega V5280) eklendi ve örnekler karıştırılarak gece boyunca 37°C'de inkübe edildi. C. Reaksiyonlar, 1 uL trifloroasetik asit (sıvı kromatografi-kütle spektrometrisi [LC-MS] sınıfı) eklenerek sonlandırıldı ve 5 dakika daha inkübe edildi.103 ).

                  Floresan mikroskobu.


                  C. albicanshücreler, 30°C'de (yukarıdaki gibi) 5 saat süreyle %2 laktat içeren GYNB veya GYNB içinde büyütüldü, gece boyunca 50 mM timerosal ile sabitlendi, iki kez deiyonize suyla yıkandı ve Fc-dektin-1 ve IgG-AF488 (p -1,3-glukan) ve ConA-AF647 (mannan). Sabit, boyanmamış hücreler kontrol olarak kullanıldı. Slaytlar, 300 uL %2 (ağırlık/hacim) agarın bir cam slayda pipetlenmesiyle hazırlandı ve ardından yaklaşık 1 mm kalınlığında bir tampon oluşturmak için üstüne ikinci bir lam yerleştirildi. Agar sertleştikten sonra (20 dakika), agar yastığına 3 uL hücre süspansiyonu pipetlendi ve üstüne bir Zeiss 1,5 kalınlığında yüksek performanslı lamel yerleştirildi (18'e 18 mm; 0,170 ± 0,005 mm). Hücreler daha sonra Airyscan yüksek çözünürlüklü modları (Zeiss Zen [mavi baskı] 2.3) kullanan bir Zeiss LSM880 konfokal sistemi kullanılarak gözlemlendi ve görüntülendi. Sistem bir alpha Plan-Apochromat 100×/1.46 yağ DIC hedefi ile donatıldı. xyz boyutlarında Nyquist örneklemesi kullanıldı. Numune, her iki iz için güç %5'e ayarlı olarak 561 nm (20 mW) ve 488 nm (25 mW) lazerle uyarıldı. Ana ışın ayırıcı, bir Zeiss çift geçişli 488/561 filtresiydi ve diğer Airyscan yol filtreleri plakaya ayarlandı. Tüm görüntüler daha sonra otomatik bir Wiener filtre ayarı kullanılarak Airyscan işlendi (Zeiss Zen [mavi baskı] 2.3). Otomatik iki bileşenli çıkarma (Zeiss Zen [mavi baskı] 2.3) kullanılarak karşılıklı konuşmayı ayarlamak için görüntüler daha sonra doğrusal olarak karıştırılmadı. Kontrast ve parlaklık ayarlandı ve parametreler tüm tedavilerde benzer değerlere ayarlandı. Ölçek çubukları uygulandı, 2D ve 3D projeksiyonlar oluşturuldu,

                  β-1,3-glukan açığa çıkaran özelliklerin kantitatif floresan mikroskopisi için, C. albicansSN250 hücreleri GYNB içinde büyütüldü, 50 mM timerosal ile sabitlendi ve 1.5 ug/mL Fc-dektin-1 artı Alexa Fluor 488'e konjüge edilmiş anti-insan IgG ile boyandı. Bir Zeiss Axioplan 2 mikroskobu kullanılarak hücreler faz DIC ile analiz edildi ve Floresan mikroskobu. Görüntüler, bir Hamamatsu C4742-95 dijital kamera (Hamamatsu Photonics, Hamamatsu, Japonya) ile Openlab v.4.04 (Improvision, Coventry, BK) kullanılarak kaydedilmiştir. β-1,3-glukan açığa çıkaran özelliklerin hacmi ve yoğunluğu, timerosal ile sabitlenmiş ve Fc-dektin-1 ile boyanmış hücrelerden ölçülmüştür. Hücreler, ProLong elmas solmaya karşı koruyucu madde (Invitrogen) içinde süspanse edildi. 3D görüntüler, bir Nikon Eclipse Ti UltraVIEW VoX dönen disk mikroskobu kullanılarak alınmıştır. Volocity yazılımı, 488 kanalındaki nesneleri tanımlamak ve hacimlerini ve ortalama floresans yoğunluğunu ölçmek için kullanıldı. septal kavşaklar,3 ). Noktalı odakların hacmi değişkendi ancak daha küçüktü (<2 μm 3 ).

                  Makrofaj bağlanması ve yutulması.


                  Kemik iliği kaynaklı makrofajlar (BMDM'ler), 12 haftalık erkek C57BL/6 farelerinin femur ve tibialarından alınan kemik iliğinden hazırlandı ve daha önce açıklandığı gibi 7 gün boyunca farklılaştırıldı (104 ) . BMDM'ler , laktat varlığında veya yokluğunda büyütülmüş C. albicans SC5314 hücreleriyle (1:3 makrofaj-maya hücre oranı) karıştırıldı . BMDM- Candida etkileşimleri, Nikon Eclipse Ti UltraVIEW VoX dönen disk mikroskobu kullanılarak 5 saniyelik aralıklarla 60 dakika boyunca DIC'de görüntülendi ve videolar Volocity yazılımı kullanılarak analiz edildi. BMDM'lerin Candida hücrelerine ilk bağlandığı konumlar ve bu ilk bağlanmadan Candida'nın tamamen yutulmasına kadar geçen süreKargo takibi yapıldı. Veriler, koşul başına üç bağımsız deneyden (video) gelen olayları temsil eder:  glikoz için n = 48; n  = glikoz artı laktat için 52.

                  Galleria mellonella enfeksiyonları.


                  Galleria mellonella enfeksiyonları, daha önce açıklandığı gibi gerçekleştirildi ( 78 ). Balmumu güvesi Galleria mellonella, UK Waxworms, Ltd.'den (Sheffield, BK) elde edildi. C. albicans suşları, 37°C'de 5 saat süreyle laktatlı veya laktatsız GYNB içinde büyütüldü ve hücreler yıkandı ve PBS içinde yeniden süspanse edildi. Varışta, larvalar deneylerden önce 2 haftaya kadar 12°C'de talaş içinde tutuldu. Başlangıçta, vahşi tip ve delesyon suşları için öldürme oranlarını karşılaştırmak üzere, 200 ila 300 mg ağırlığındaki 15 larvadan oluşan gruplar, 1 x 10⁸ , 5 x 10⁷ , 5 x 10⁶ ve 4 x 10⁵ hücre /mL ile aşılandı. vahşi tip suşu. Bu karşılaştırmalara dayanarak, 2,5 × 10⁶'lık bir dozSonraki deneylerde 5 hücre kullanıldı. Her larvaya, 0.5 mL'lik bir BD Micro-Fine insülin şırıngası kullanılarak ikinci proleg boyunca 50 uL mantar hücresi süspansiyonu enjekte edildi ve enjekte edilmemiş ve PBS kontrolleri dahil edildi. Larvalar daha sonra karanlıkta 37°C'de inkübe edildi ve enfeksiyondan 10 gün sonra hayatta kalma miktarı belirlendi.

                  Veri analizi ve istatistik.


                  C. albicans mutantları, uygun izojenik ebeveyn suşu ile karşılaştırıldı. Akış sitometrisi verileri, MacBook için FlowJo 10.7.2 yazılımı kullanılarak analiz edildi ve ImageStream analizleri, IDEAS 6.3 yazılımı kullanılarak yapıldı. Yüksek çözünürlüklü konfokal mikroskopi görüntüleri, ZEISS Zen lite, mavi ve siyah, sürüm 3.4 kullanılarak analiz edildi ve işlenen görüntüler, IMARIS yazılımı sürüm 9.7 kullanılarak yumuşatıldı. Şekiller Adobe Illustrator 2021 ve Adobe Photoshop 2021 for MacBook kullanılarak hazırlanmıştır. Veriler, en az üç bağımsız deneyden elde edilen sonuçların ortalama ± standart sapması olarak ifade edildi ve istatistiksel analizler, Prism'de hayatta kalma eğrileri için Tukey çoklu karşılaştırma testi veya log rank (Mantel-Cox) testi ile varyans analizi (ANOVA) kullanılarak yapıldı. GraphPad 9.0 (*, P  < 0.05; **,P  < 0.01; ***, P  < 0.001).

                  Git: TEŞEKKÜRLER


                  Bu çalışma Birleşik Krallık Tıbbi Araştırma Konseyi'nden (MR/M026663/1; MR/M026663/2) ve Tıbbi Araştırma Konseyi Tıbbi Mikoloji Merkezi'nden (MR/N006364/1; MR/N006364/2) bir program hibesi ile desteklenmiştir. . NARG, Kıdemli Araştırmacı (101873/Z/13/Z), İşbirliği (200208/A/15/Z; 215599/Z/19/Z) ve Stratejik Ödüller (097377/Z11/Z) için Wellcome desteğini kabul eder. MGN, bir ERC Advanced Grant (833247) ve Hollanda Bilimsel Araştırma Kuruluşunun Spinoza Grant'i tarafından desteklenmiştir.

                  Git: DİPNOTLAR

                  İleten Bu makale, Ana Traven, Biyotıp Keşif Enstitüsü, Monash Üniversitesi ve Robert Wheeler, Maine Üniversitesi tarafından yapılan incelemeleri düzenleyen ve güvence altına alan Amerikan Mikrobiyoloji Akademisi Üyesi Alistair JP Brown'ın doğrudan katkısıdır.
                  Git: REFERANSLAR

                  1. Kahverengi GD, Denning DW, Gow NAR, Levitz SM, Netea MG, Beyaz TC. 2012. Gizli katiller: insan mantar enfeksiyonları . Sci Transl Med 4 :165rv13. doi: 10.1126/scitranslmed.3004404. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  2. Pappas PG, Lionakis MS, Arendrup MC, Ostrosky-Zeichner L, Kullberg BJ. 2018. İnvaziv kandidiyaz . Nat Rev Dis Prim 4 :18026. doi: 10.1038/nrdp.2018.26. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  3. Kahverengi GD. 2011. Doğal antifungal bağışıklık: fagositlerin anahtar rolü . Annu Rev Immunol 29 :1–21. doi: 10.1146/annurev-immunol-030409-101229. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  4. Netea MG, Joosten LAB, van der Meer JWM, Kullberg BJ, van de Veerdonk FL. 2015. Candida mantar enfeksiyonlarına karşı bağışıklık savunması . Nat Rev Immunol 15 :630–642. doi: 10.1038/nri3897. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  5. Lionakis MS, Levitz SM. 2018. Mantar enfeksiyonlarının konak kontrolü: temel çalışmalardan ve insan kohortlarından alınan dersler . Annu Rev Immunol 36 :157–191. doi: 10.1146/annurev-immunol-042617-053318. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  6. Denning DW, Kneale M, Sobel JD, Rautemaa-Richardson R. 2018. Global load of recurrent vulvovaginal candidiasis: sistematik bir derleme . Lancet Infect Dis 18 :e339–e347. doi: 10.1016/S1473-3099(18)30103-8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  7. Netea MG, Gow NAR, Munro CA, Bates S, Collins C, Ferwerda G, Hobson RP, Bertram G, Hughes HB, Jansen T, Jacobs L, Buurman ET, Gijzen K, Williams DL, Torensma R, McKinnon A, MacCallum DM, Odds FC, Van der Meer JWM, Brown AJP, Kullberg BJ. 2006. Candida albicans'ın bağışıklık algılaması, mannanlar ve glukanların lektin ve Toll benzeri reseptörler tarafından işbirlikçi olarak tanınmasını gerektirir . J Clin Invest 116 :1642–1650. doi: 10.1172/JCI27114. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  8. Erwig LP, Gow NAR. 2016. Fungal patojenlerin fagositler ile etkileşimleri . Nat Rev Microbiol 14 :163–176. doi: 10.1038/nrmicro.2015.21. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  9. Dambuza IM, Levitz SM, Netea MG, Brown GD. 2017. Mantar tanıma ve konakçı savunma mekanizmaları . Mikrobiyoloji Spektr 5 . doi: 10.1128/microbiolspec.FUNK-0050-2016. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  10. Netea MG, Balkwill F, Chonchol M, Cominelli F, Donath MY, Giamarellos-Bourboulis EJ, Golenbock D, Gresnigt MS, Heneka MT, Hoffman HM, Hotchkiss R, Joosten LAB, Kastner DL, Korte M, Latz E, Libby P, Mandrup-Poulsen T, Mantovani A, Mills KHG, Nowak KL, O'Neill LA, Pickkers P, van der Poll T, Ridker PM, Schalkwijk J, Schwartz DA, Siegmund B, Steer CJ, Tilg H, van der Meer JWM, van de Veerdonk FL, Dinarello CA. 2017. Enflamasyon için yol gösterici bir harita . Nat Immunol 18 :826–831. doi: 10.1038/ni.3790. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  11. Urban CF, Reichard U, Brinkmann V, Zychlinsky A. 2006. Nötrofil hücre dışı tuzakları, Candida albicans maya ve hif formlarını yakalar ve öldürür . Hücre Mikrobiol 8 :668–676. doi: 10.1111/j.1462-5822.2005.00659.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  12. Gow NAR, van de Veerdonk FL, Brown AJP, Netea MG. 2011. Candida albicans morfogenezi ve konak savunması: işgali kolonizasyondan ayırt etmek . Nat Rev Microbiol 10 :112–122. doi: 10.1038/nrmicro2711. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  13. Brown GD, Gordon S. 2001. β-glukanlar için yeni bir reseptör . Doğa 413 :36–37. doi: 10.1038/35092620. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  14. Kankkunen P, Teirilä L, Rintahaka J, Alenius H, Wolff H, Matikainen S. 2010. (1-3)-β-Glukanlar, insan makrofajlarında hem dektin-1 hem de NLRP3 iltihaplanmasını aktive eder . J Immunol 184 :6335–6342. doi: 10.4049/jimmunol.0903019. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  15. Ross GD, Cain JA, Myones BL, Newman SL, Lachmann PJ. 1987. β-glukanlar için membran kompleman reseptörü tip üçün (CR3) özgüllüğü . Tamamlayıcı 4 :61–74. doi: 10.1159/000463010. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  16. Brown GD, Taylor PR, Reid DM, Willment JA, Williams DL, Martinez-Pomares L, Wong SYC, Gordon S. 2002. Dectin-1, makrofajlar üzerinde önemli bir β-glukan reseptörüdür . J Exp Med 196 :407–412. doi: 10.1084/jem.20020470. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  17. Brown GD, Gordon S. 2003. Fungal β-glukanlar ve memeli bağışıklığı . Bağışıklık 19 :311–315. doi: 10.1016/S1074-7613(03)00233-4. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  18. Taylor PR, Tsoni SV, Willment JA, Dennehy KM, Rosas M, Findon H, Haynes K, Steele C, Botto M, Gordon S, Brown GD. 2007. Dectin-1, β-glukan tanıma ve mantar enfeksiyonunun kontrolü için gereklidir . Nat Immunol 8 :31–38. doi: 10.1038/ni1408. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  19. Saijo S, Fujikado N, Furuta T, Chung S, Kotaki H, Seki K, Sudo K, Akira S, Adachi Y, Ohno N, Kinjo T, Nakamura K, Kawakami K, Iwakura Y. 2007. Dectin-1 is Pneumocystis carinii'ye karşı konukçu savunması için gereklidir, ancak Candida albicans'a karşı gerekli değildir . Nat Immunol 8 :39–46. doi: 10.1038/ni1425. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  20. Werner JL, Metz AE, Horn D, Schoeb TR, Hewitt MM, Schwiebert LM, Faro-Trindade I, Brown GD, Steele C. 2009. Aspergillus fumigatus'a karşı pulmoner savunmada dektin-1 β-glukan reseptörü için gerekli rol . J Immunol 182 :4938–4946. doi: 10.4049/jimmunol.0804250. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  21. Ferwerda B, Ferwerda G, Plantinga TS, Willment JA, van Spriel AB, Venselaar H, Elbers CC, Johnson MD, Cambi A, Huysamen C, Jacobs L, Jansen T, Verheijen K, Masthoff L, Morré SA, Vriend G , Williams DL, Perfect JR, Joosten LAB, Wijmenga C, van der Meer JWM, Adema GJ, Kullberg BJ, Brown GD, Netea MG. 2009. İnsan dektin-1 eksikliği ve mukokutanöz mantar enfeksiyonları . N Engl J Med 361 :1760–1767. doi: 10.1056/NEJMoa0901053. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  22. Marakalala MJ, Vautier S, Potrykus J, Walker LA, Shepardson KM, Hopke A, Mora-Montes HM, Kerrigan A, Netea MG, Murray GI, MacCallum DM, Wheeler R, Munro CA, Gow NAR, Cramer RA, Brown AJP, Kahverengi GD. 2013. Candida albicans'ın in vivo diferansiyel adaptasyonu, dectin-1 ile immün tanımayı modüle eder . PLoS Pathog 9 :e1003315. doi: 10.1371/journal.ppat.1003315. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  23. Yokuş Altı DM. 2007. Bağışıklık tepkisinden kaçış mekanizmaları, sayfa 429–442. Brown GD, Netea MG (ed), İmmünoloji mantar enfeksiyonları. Springer, Dordrecht, Hollanda. [ Google Akademik ]
                  24. Marcos CM, de Oliveira HC, de Melo WC, da Silva JF, Assato PA, Scorzoni L, Rossi SA, de Paula ve Silva AC, Mendes-Giannini MJ, Fusco-Almeida AM. 2016. Patojenik mantarların anti-bağışıklık stratejileri . Ön Hücre Enfekte Mikrobiol 6 :142. doi: 10.3389/fcimb.2016.00142. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  25. Naglik J, Albrecht A, Bader O, Hube B. 2004. Candida albicans proteinazları ve konakçı/patojen etkileşimleri . Hücre Mikrobiol 6 :915–926. doi: 10.1111/j.1462-5822.2004.00439.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  26. Rementeria A, López-Molina N, Ludwig A, Vivanco AB, Bikandi J, Pontón J, Garaizar J. 2005. Aspergillus fumigatus virülansında yer alan genler ve moleküller . Rev Iberoam Micol 22 :1–23. doi: 10.1016/S1130-1406(05)70001-2. (İspanyolca'da.). [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  27. Frohner IE, Bourgeois C, Yatsyk K, Majer O, Kuchler K. 2009. Candida albicans hücre yüzeyi süperoksit dismutazları, doğuştan gelen bağışıklık denetiminden kaçmak için konakçıdan türetilen reaktif oksijen türlerini bozar . Mol Microbiol 71 :240–252. doi: 10.1111/j.1365-2958.2008.06528.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  28. Lorenz MC, Bender JA, Fink GR. 2004. Candida albicans'ın makrofajlar tarafından içselleştirilmesi üzerine Transkripsiyonel Tepkisi . Ökaryot Hücre 3 :1076–1087. doi: 10.1128/EC.3.5.1076-1087.2004. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  29. Rodaki A, Bohovych IM, Enjalbert B, Young T, Odds FC, Gow NAR, Brown AJP. 2009. Glikoz, mantar patojeni Candida albicans'ta stres direncini arttırır . Mol Biol Celi 20 :4845–4855. doi: 10.1091/mbc.e09-01-0002. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  30. Wellington M, Koselny K, Sutterwala FS, Krysan DJ. 2014. Candida albicans, makrofajlarda NLRP3 aracılı piroptozu tetikliyor . Ökaryot Hücre 13 :329–340. doi: 10.1128/EC.00336-13. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  31. Tucey TM, Verma J, Harrison PF, Snelgrove SL, Lo TL, Scherer AK, Barugahare AA, Powell DR, Wheeler RT, Hickey MJ, Beilharz TH, Naderer T, Traven A. 2018. Glikoz homeostazı, bağışıklık hücresi için önemlidir Candida mücadelesi sırasında canlılık ve sistemik mantar enfeksiyonunun hayatta kalması . Hücre Metab 27 :988–1006.e7. doi: 10.1016/j.cmet.2018.03.019. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  32. Lewis LE, Bain JM, Lowes C, Gillespie C, Rudkin FM, Gow NAR, Erwig LP. 2012. Makrofajlar tarafından Candida albicans fagositozunun aşamaya özgü değerlendirmesi, hücre duvarı bileşimini ve morfogenezi temel belirleyiciler olarak tanımlar . PLoS Pathog 8 :e1002578. doi: 10.1371/journal.ppat.1002578. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  33. Maxson ME, Naj X, O'Meara TR, Plumb JD, Cowen LE, Grinstein S. 2018. İntegrin tabanlı difüzyon bariyeri, mikrobiyostatik engellenmiş fagozomların oluşumunu sağlayan zar alanlarını ayırır . Elife 7 :e34798. doi: 10.7554/eLife.34798. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  34. Bain JM, Alonso MF, Childers DS, Walls CA, Mackenzie K, Pradhan A, Lewis LE, Louw J, Avelar GM, Larcombe DE, Netea MG, Gow NAR, Brown GD, Erwig LP, Brown AJP. 2021. Bağışıklık hücreleri katlanır ve mantar hiflerine zarar verir . Proc Natl Acad Sci USA 118 :e2020484118. doi: 10.1073/pnas.2020484118. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  35. Sem X, Le GTT, Tan ASM, Tso G, Yurieva M, Liao WWP, Lum J, Srinivasan KG, Poidinger M, Zolezzi F, Pavelka N. 2016. Fungal hücre duvarında β-Glucan maruziyeti, rekabetçi ile sıkı bir şekilde ilişkilidir. Fare gastrointestinal sisteminde Candida türlerinin uygunluğu . Front Cell Infect Microbiol 6 :186. doi: 10.3389/fcimb.2016.00186. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  36. Douglas CM, D'Ippolito JA, Shei GJ, Meinz M, Onishi J, Marrinan JA, Li W, Abruzzo GK, Flattery A, Bartizal K, Mitchell A, Kurtz MB. 1997. Candida albicans'ın FKS1 geninin 1,3-beta-d-glukan sentaz inhibitörlerinin temel hedefi olarak tanımlanması . Antimicrob Agents Chemother 41 :2471–2479. doi: 10.1128/AAC.41.11.2471. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  37. Fonzi W. 1999. Candida albicans'ın PHR1 ve PHR2'si, β-1,3- ve β-1,6-glukanların uygun şekilde çapraz bağlanması için gerekli varsayılan glikosidazları kodlar . J Bacteriol 181 :7070–7079. doi: 10.1128/JB.181.22.7070-7079.1999. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  38. Salon RA, Bates S, Lenardon MD, MacCallum DM, Wagener J, Lowman DW, Kruppa MD, Williams DL, Odds FC, Brown AJP, Gow NAR. 2013. Mnn2 mannosiltransferaz ailesi, Candida albicans'ın mannoprotein fibril uzunluğunu, bağışıklık tanınmasını ve virülansını modüle eder . PLoS Pathog 9 :e1003276. doi: 10.1371/journal.ppat.1003276. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  39. Lenardon MD, Sood P, Dorfmueller HC, Brown AJP, Gow NAR. 2020. Candida albicans hücre duvarının skaler nano yapısı; moleküler, hücresel ve ultrastrüktürel analiz ve yorumlama . Hücre Sörfü 6 :100047. doi: 10.1016/j.tcsw.2020.100047. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  40. Hopke A, Brown AJP, Hall RA, Wheeler RT. 2018. Stres adaptasyonunda ve bağışıklıktan kaçınmada dinamik mantar hücre duvarı mimarisi . Trendler Microbiol 26 :284–295. doi: 10.1016/j.tim.2018.01.007. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  41. Graus MS, Wester MJ, Lowman DW, Williams DL, Kruppa MD, Martinez CM, Young JM, Pappas HC, Lidke KA, Neumann AK. 2018. Mannan moleküler alt yapıları, Candida'da nano ölçekli glukan maruziyetini kontrol ediyor . Hücre Rep 24 :2432–2442.e5. doi: 10.1016/j.celrep.2018.07.088. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  42. Yang M, Solis NV, Marshall M, Garleb R, Zhou T, Wang D, Swidergall M, Pearlman E, Filler SG, Liu H. 2022. Endo-1,3-glucanase Eng1 tarafından β-glukan maruziyetinin kontrolü1 Candida albicans'ta virülansı modüle eder . PLoS Pathog 18 :e1010192. doi: 10.1371/journal.ppat.1010192. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  43. Childers DS, Avelar GM, Bain JM, Pradhan A, Larcombe DE, Netea MG, Erwig LP, Gow NAR, Brown AJP. 2020. Epitop tıraşı, mantar bağışıklığından kaçınmayı teşvik eder . mBio 11 :e00984-20. doi: 10.1128/mBio.00984-20. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  44. Pradhan A, Ma Q, de Assis LJ, Yapraklar I, Larcombe DE, Rodriguez Rondon AV, Nev OA, Brown AJP. 2021. Mantar patojenlerinde beklenen stres tepkileri ve bağışıklıktan kaçınma . Trendler Microbiol 29 :416–427. doi: 10.1016/j.tim.2020.09.010. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  45. Sherrington SL, Sorsby E, Mahtey N, Kumwenda P, Lenardon MD, Brown I, Ballou ER, MacCallum DM, Hall RA. 2017. Candida albicans'ın çevresel pH'a adaptasyonu, hücre duvarının yeniden şekillenmesini tetikler ve doğuştan gelen bağışıklık tanımayı geliştirir . PLoS Pathog 13 :e1006403. doi: 10.1371/journal.ppat.1006403. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  46. ​​Cottier F, Sherrington S, Cockerill S, del Olmo Toledo V, Kissane S, Tournu H, Orsini L, Palmer GE, Pérez JC, Salon RA. 2019. Çevresel pH'a yanıt olarak Candida albicans β-glukanın yeniden maskelenmesi, çekirdek algılama ile düzenlenir . mBio 10 :e02347-19. doi: 10.1128/mBio.02347-19. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  47. Pradhan A, Avelar GM, Bain JM, Childers DS, Larcombe DE, Netea MG, Shekhova E, Munro CA, Brown GD, Erwig LP, Gow NAR, Brown AJP. 2018. Hipoksi, mitokondriyal ve cAMP-protein kinaz A sinyali yoluyla Candida albicans hücre yüzeyinde β-glukan maskelemesini tetikleyerek bağışıklıktan kaçınmayı teşvik eder . mBio 9 :e01318-18. doi: 10.1128/mBio.01318-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  48. Pradhan A, Avelar GM, Bain JM, Childers D, Pelletier C, Larcombe DE, Shekhova E, Netea MG, Brown GD, Erwig L, Gow NAR, Brown AJP. 2019. Kanonik olmayan sinyalleme, mantar hücre duvarı PAMP'lerinde bağışıklıktan kaçmayı sağlayan değişikliklere aracılık eder . Nat Komün 10 :5315. doi: 10.1038/s41467-019-13298-9. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  49. Ballou ER, Avelar GM, Childers DS, Mackie J, Bain JM, Wagener J, Kastora SL, Panea MD, Hardison SE, Walker LA, Erwig LP, Munro CA, Gow NAR, Brown GD, MacCallum DM, Brown AJP. 2016. Laktat sinyali, fungal β-glukan maskelemesini ve bağışıklıktan kaçınmayı düzenler . Nat Microbiol 2 :16238. doi: 10.1038/nmicrobiol.2016.238. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  50. Lagree K, Woolford CA, Huang MY, May G, McManus CJ, Solis NV, Filler SG, Mitchell AP. 2020. Candida albicans Mig1 ve Mig2'nin glikoz baskısı, patojenite özellikleri ve SNF1 esasında rolleri . PLoS Genet 16 :e1008582. doi: 10.1371/journal.pgen.1008582. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  51. Cao C, Wu M, Bing J, Tao L, Ding X, Liu X, Huang G. 2017. PKA katalitiğinin boş bir mutantında fenotipik, transkriptomik ve fosfoproteomik analizlerle ortaya çıkan cAMP/PKA yolunun küresel düzenleyici rolleri Candida albicans'ın alt birimi . Mol Microbiol 105 :46–64. doi: 10.1111/mmi.13681. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  52. Ribeiro LFC, Chelius C, Boppidi KR, Naik NS, Hossain S, Ramsey JJJ, Kumar J, Ribeiro LF, Ostermeier M, Tran B, Ah Goo Y, de Assis LJ, Ulas M, Bayram O, Goldman GH, Lincoln S, Srivastava R, Harris SD, Marten MR. 2019. Aspergillus nidulans PKA fosforilomunun kapsamlı analizi, yeni bir CreA düzenleme modu tanımlıyor . mBio 10 :e02825-13. doi: 10.1128/mBio.02825-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  53. de Assis LJ, Ulaş M, Ries LNA, El Ramli NAM, Sarıkaya-Bayram O, Braus GH, Bayram O, Goldman GH. 2018. F-box proteinleri Fbx23 ve Fbx47 tarafından Aspergillus nidulans CreA aracılı katabolit baskısının düzenlenmesi . mBio 9 :e00840-18. doi: 10.1128/mBio.00840-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  54. Aref R, Schüller HJ. 2020. Epigenetik düzenleyiciler Sin3, Cyc8 ve Tup1'in işe alınmasından sorumlu Cti6 çekirdek alanının fonksiyonel analizi . Curr Genet 66 :1191–1203. doi: 10.1007/s00294-020-01109-4. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  55. Cupertino FB, Virgilio S, Freitas FZ, Candido T de S, Bertolini MC. 2015. Neurospora crassa'da CRE-1, RCO-1 ve RCM-1 proteinleri tarafından glikojen metabolizmasının düzenlenmesi. CRE-1'in merkezi transkripsiyonel düzenleyici olarak rolü . Fungal Genet Biol 77 :82–94. doi: 10.1016/j.fgb.2015.03.011. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  56. Hedbacker K, Carlson M. 2008. Mayada SNF1/AMPK yolları . Ön Biosci 13 :2408–2420. doi: 10.2741/2854. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  57. Guillou V, Plourde-Owobi L, Parrou JL, Goma G, François J. 2004. Saccharomyces cerevisiae'nin büyüme dinamiklerinde yedek karbonhidratların rolü . FEMS Maya Çöz. 4 :773–787. doi: 10.1016/j.femsyr.2004.05.005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  58. de Assis LJ, Manfiolli A, Mattos E, Fabri JHTM, Malavazi I, Jacobsen ID, Brock M, Cramer RA, Thammahong A, Hagiwara D, Ries LNA, Goldman GH. 2018. Protein kinaz A ve yüksek ozmolariteli gliserol yanıt yolları, Aspergillus fumigatus'ta hücre duvarı karbonhidrat mobilizasyonunu işbirliği içinde kontrol eder . mBio 9 :e01952-18. doi: 10.1128/mBio.01952-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  59. de Assis LJ, Silva LP, Bayram O, Dowling P, Kniemeyer O, Krüger T, Brakhage AA, Chen Y, Dong L, Tan K, Wong KH, Ries LNA, Goldman GH. 2021. Filamentli mantarlarda karbon katabolit baskısı, transkripsiyon faktörü CreA'nın fosforilasyonu ile düzenlenir . mBio 12 :e03146-20. doi: 10.1128/mBio.03146-20. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  60. Brown GD, Gordon S. 2005. Fungal β-glukanların immün tanınması . Hücre Mikrobiol 7 :471–479. doi: 10.1111/j.1462-5822.2005.00505.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  61. Garfoot AL, Shen Q, Wüthrich M, Klein BS, Rappleye CA. 2016. Eng1 β-glukanaz, β-glukan maruziyetini azaltarak Histoplasma virülansını artırır . mBio 7 :e01388-15. doi: 10.1128/mBio.01388-15. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  62. Lowman DW, Greene RR, Bearden DW, Kruppa MD, Pottier M, Monteiro MA, Soldatov DV, Ensley HE, Cheng SC, Netea MG, Williams DL. 2014. Candida albicans hiphal glukandaki yeni yapısal özellikler, hifanın mayaya karşı farklı doğuştan gelen bağışıklık tanıması için bir temel sağlar . J Biol Chem 289 :3432–3443. doi: 10.1074/jbc.M113.529131. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  63. Bain JM, Louw J, Lewis LE, Okai B, Walls CA, Ballou ER, Walker LA, Reid D, Munro CA, Brown AJP, Brown GD, Gow NAR, Erwig LP. 2014. Candida albicans hifa oluşumu ve β-glukanın mannan maskelemesi makrofaj fagozom olgunlaşmasını inhibe eder . mBio 5 :e01874-14. doi: 10.1128/mBio.01874-14. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  64. Granger BL. 2018. Candida albicans'ın maya duvarı proteini 1'in doğal ve genetik olarak etiketlenmiş versiyonlarının erişilebilirliği ve glukan maskelemesine katkısı . PLoS Bir 13 :e0191194. doi: 10.1371/journal.pone.0191194. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  65. Inoue M, Shinohara ML. 2014. Mantar tespiti için örüntü tanıma reseptörlerinin kümelenmesi . PLoS Pathog 10 :e1003873. doi: 10.1371/journal.ppat.1003873. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  66. Sahasrabudhe NM, Dokter-Fokkens J, de Vos P. 2016. Parçacıklı β-glukanlar, insan dendritik hücrelerinde TLR4 ve Dectin-1'i sinerjistik olarak aktive eder . Mol Nutr Food Res 60 :2514–2522. doi: 10.1002/mnfr.201600356. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  67. Weiss EL. 2012. Anne ve kızı hücrelerinin mitotik çıkışı ve ayrılması . Genetik 192 :1165–1202. doi: 10.1534/genetics.112.145516. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  68. Baladrón V, Ufano S, Dueñas E, Martín-Cuadrado AB, del Rey F, Vázquez de Aldana CR. 2002. Septumun kızı tarafında lokalize bir endo-1,3-β-glukanaz olan Eng1p, Saccharomyces cerevisiae'de hücre ayrımında yer alır . Ökaryot Hücre 1 :774–786. doi: 10.1128/EC.1.5.774-786.2002. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  69. Esteban PF, Ríos I, García R, Dueñas E, Plá J, Sánchez M, de Aldana CRV, del Rey F. 2005. Hücre ayrımında yer alan bir endo-1,3-β-glukanazı kodlayan CaENG1 geninin karakterizasyonu Candida albicans'ta . Curr Microbiol 51 :385–392. doi: 10.1007/s00284-005-0066-2. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  70. Gantner BN, Simmons RM, Underhill DM. 2005. Dectin-1, Candida albicans mayasının makrofaj tanımasına aracılık eder, ancak filamentlere değil . EMBO J 24 :1277–1286. doi: 10.1038/sj.emboj.7600594. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  71. Chen T, Jackson JW, Tams RN, Davis SE, Sparer TE, Reynolds TB. 2019. Candida albicans β (1,3)-glukan maruziyeti, Cek1 yolunun aktivasyonu ile desteklenir . PLoS Genet 15 :e1007892. doi: 10.1371/journal.pgen.1007892. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  72. Vendele I, Willment JA, Silva LM, Palma AS, Chai W, Liu Y, Feizi T, Spyrou M, Stappers MHT, Brown GD, Gow NAR. 2020. C tipi lektin reseptörü problarını tespit eden Mannan, mantar hücre duvarlarında çeşitli kimyasal, uzamsal ve filogenetik heterojenliğe sahip immün epitopları tanır . PLoS Pathog 16 :e1007927. doi: 10.1371/journal.ppat.1007927. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  73. Huang G, Huang Q, Wei Y, Wang Y, Du H. 2019. Candida albicans'ta Ras/cAMP/protein kinaz A yolunun çoklu rolleri ve çeşitli düzenlemeleri . Mol Microbiol 111 :6–16. doi: 10.1111/mmi.14148. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  74. Childers DS, Raziunaite I, Mol Avelar G, Mackie J, Budge S, Stead D, Gow NAR, Lenardon MD, Ballou ER, MacCallum DM, Brown AJP. 2016. Patojenik bir mayadaki ubiquitination hedeflerinin yeniden bağlanması, metabolik esnekliği, konakçı kolonizasyonunu ve virülansı teşvik eder . PLoS Pathog 12 :e1005566. doi: 10.1371/journal.ppat.1005566. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  75. Bockmühl DP, Krishnamurthy S, Gerads M, Sonneborn A, Ernst JF. 2001. İki protein kinaz A izoformu Tpk1p ve Tpk2p'nin Candida albicans'ın morfogenezinde ve büyümesinde belirgin ve gereksiz rolleri . Mol Microbiol 42 :1243–1257. doi: 10.1046/j.1365-2958.2001.02688.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  76. Ene IV, Cheng SC, Netea MG, Kahverengi AJP. 2013. Fizyolojik olarak ilgili karbon kaynağı laktat üzerinde Candida albicans hücrelerinin büyümesi, bağışıklık hücreleri tarafından tanınmalarını ve fagositozlarını etkiler . Immun 81 :238–248'i enfekte edin. doi: 10.1128/IAI.01092-12. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  77. Ene IV, Adya AK, Wehmeier S, Brand AC, Maccallum DM, Gow N a R, Brown AJP. 2012. Konak karbon kaynakları, bir mantar patojeninde hücre duvarı mimarisini, ilaç direncini ve virülansı modüle eder . Hücre Mikrobiol 14 :1319–1335. doi: 10.1111/j.1462-5822.2012.01813.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  78. Brennan M, Thomas DY, Whiteway M, Kavanagh K. 2002. Farelerde Candida albicans mutantlarının virülansı ile Galleria mellonella larvaları arasındaki korelasyon . FEMS Immunol Med Microbiol 34 :153–157. doi: 10.1111/j.1574-695X.2002.tb00617.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  79. Champion O, Titball R, Bates S. 2018. Fungal patojenlerin çalışmasında güvenilir ve tekrarlanabilir sonuçlar sağlamak için G. mellonella larvalarının standardizasyonu . J Mantarları (Basel) 4 :108. doi: 10.3390/jof4030108. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  80. Casadevall A, Pirofski L. 2003. Mikrobiyal patogenezin hasar-tepki çerçevesi . Nat Rev Microbiol 1 :17–24. doi: 10.1038/nrmicro732. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  81. Kahverengi AJP, Kahverengi GD, Netea MG, Gow NAR. 2014. Metabolizma, Candida immünojenisitesini ve patojenitesini birçok seviyede etkiler . Trendler Microbiol 22 :614–622. doi: 10.1016/j.tim.2014.07.001. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  82. Brown AJP, Cowen LE, di Pietro A, Quinn J. 2017. Stres adaptasyonu . Microbiol Spectr 5 :139–148. doi: 10.1128/microbiolspec.FUNK-0048-2016. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  83. d'Enfert C, Kaune AK, Alaban LR, Chakraborty S, Cole N, Delavy M, Kosmala D, Marsaux B, Fróis-Martins R, Morelli M, Rosati D, Valentine M, Xie Z, Emritloll Y, Warn PA , Bequet F, Bougnoux ME, Bornes S, Gresnigt MS, Hube B, Jacobsen ID, Legrand M, Leibundgut-Landmann S, Manichanh C, Munro CA, Netea MG, Queiroz K, Roget K, Thomas V, Thoral C, Van den Abbeele P, Walker AW, Kahverengi AJP. 2021. Mantar-konakçı-mikrobiyota etkileşiminin Candida albicans enfeksiyonları üzerindeki etkisi: mevcut bilgiler ve yeni bakış açıları . FEMS Microbiol Rev 45 :fuaa060. doi: 10.1093/femsre/fuaa060. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  84. Potrykus J, Stead D, MacCallum DM, Urgast DS, Raab A, van Rooijen N, Feldmann J, Brown AJP. 2013. Derin yerleşimli kandidiyazis sırasında mantar demir mevcudiyeti, sistemik ve yerel olayları içeren karmaşık bir etkileşim ile tanımlanır . PLoS Pathog 9 :e1003676. doi: 10.1371/journal.ppat.1003676. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  85. Ho J, Yang X, Nikou SA, Kichik N, Donkin A, Ponde NO, Richardson JP, Gratacap RL, Archambault LS, Zwirner CP, Murciano C, Henley-Smith R, Thavaraj S, Tynan CJ, Gaffen SL, Hube B, Wheeler RT, Moyes DL, Naglik JR. 2019. Candidalysin, epidermal büyüme faktörü reseptörü yoluyla doğuştan gelen epitelyal bağışıklık tepkilerini aktive eder . Nat Komün 10 :2297. doi: 10.1038/s41467-019-09915-2. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  86. Wheeler RT, Fink GR. 2006. İlaca duyarlı bir genetik ağ, mantarları bağışıklık sisteminden maskeler . PLoS Pathog 2 :e35. doi: 10.1371/journal.ppat.0020035. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  87. Wheeler RT, Kombe D, Agarwala SD, Fink GR. 2008. Enfeksiyon ve ilaç tedavisi sırasında dinamik, morfotipe özgü Candida albicans β-glukan maruziyeti . PLoS Pathog 4 :e1000227. doi: 10.1371/journal.ppat.1000227. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  88. Hopke A, Nicke N, Hidu EE, Degani G, Popolo L, Wheeler RT. 2016. Nötrofil saldırısı, hücre dışı tuzağa bağımlı Candida hücre duvarının yeniden şekillenmesini ve değiştirilmiş bağışıklık tanımayı tetikler . PLoS Pathog 12 :e1005644. doi: 10.1371/journal.ppat.1005644. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  89. Galán-Díez M, Arana DM, Serrano-Gómez D, Kremer L, Casasnovas JM, Ortega M, Cuesta-Domínguez A, Corbí AL, Pla J, Fernández-Ruiz E. 2010. Candida albicans β-glukan maruziyeti kontrol edilir dektin-1 yoluyla tetiklenen bağışıklık tepkilerini modüle eden mantar CEK1 aracılı mitojenle aktive olan protein kinaz yolu tarafından . Immun 78'i enfekte edin : 1426–1436. doi: 10.1128/IAI.00989-09. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  90. Vargas G, Rocha JDB, Oliveira DL, Albuquerque PC, Frases S, Santos SS, Nosanchuk JD, Gomes AMO, Medeiros LCAS, Miranda K, Sobreira TJP, Nakayasu ES, Arigi EA, Casadevall A, Guimaraes AJ, Rodrigues ML, Freire-de-Lima CG, Almeida IC, Nimrichter L. 2015. Candida albicans tarafından salınan hücre dışı veziküllerin bileşimsel ve immünobiyolojik analizleri . Hücre Mikrobiol 17 :389–407. doi: 10.1111/cmi.12374. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  91. Gil-Bona A, Llama-Palacios A, Parra CM, Vivanco F, Nombela C, Monteoliva L, Gil C. 2015. Proteomik, Candida albicans'ta klasik sitoplazmik proteinlerin taşıyıcıları olarak hücre dışı vezikülleri çözer . J Proteome Res 14 :142–153. doi: 10.1021/pr5007944. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  92. Ene IV, Walker L, Schiavone M, Lee KK, Martin-Yken H, Dague E, Gow NAR, Munro CA, Brown AJP. 2015. Hücre duvarı yeniden modelleme enzimleri, mantar hücre duvarı esnekliğini ve ozmotik stres direncini modüle eder . mBio 6 : e00986-15. doi: 10.1128/mBio.00986-15. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  93. Walker L, Sood P, Lenardon MD, Milne G, Olson J, Jensen G, Wolf J, Casadevall A, Adler-Moore J, Gow NAR. 2018. Mantar hücre duvarının viskoelastik özellikleri, AmBisome'ın bozulmamış lipozom vezikülleri olarak hareket etmesine izin verir . mBio 9 :e02383-17. doi: 10.1128/mBio.02383-17. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  94. Hasim S, Allison DP, Retterer ST, Hopke A, Wheeler RT, Doktycz MJ, Reynolds TB. 2017. Bazı Candida albicans mutantlarında β-(1,3)-Glucan maskesinin kaldırılması, hücre duvarı yüzey pürüzlülüğündeki artışlar ve hücre duvarı esnekliğindeki azalmalarla ilişkilidir . Bağışıklık 85 :e00601-16'yı enfekte edin. doi: 10.1128/IAI.00601-16. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  95. de Assis LJ, Silva LP, Liu L, Schmitt K, Valerius O, Braus GH, Ries LNA, Goldman GH. 2020. Yüksek ozmolariteli gliserol mitojenle aktive olan protein kinaz, filamentli mantarlarda glikoz katabolit baskısını düzenler . PLoS Genet 16 :e1008996. doi: 10.1371/journal.pgen.1008996. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  96. Santangelo GM. 2006. Saccharomyces cerevisiae'de glikoz sinyali . Microbiol Mol Biol Rev 70 :253–282. doi: 10.1128/MMBR.70.1.253-282.2006. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  97. Lopes JP, Stylianou M, Backman E, Holmberg S, Jass J, Claesson R, Urban CF. 2018. Düşük oksijenli ortamlarda bağışıklık gözetiminden kaçınmak, Candida albicans virülansını artırıyor . mBio 9 :e02120-18. doi: 10.1128/mBio.02120-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  98. Williams RB, Lorenz MC. 2020. Birden fazla alternatif karbon yolu, Candida albicans stres direncini, bağışıklık etkileşimlerini ve virülansı desteklemek için birleşiyor . mBio 11 :e03070-19. doi: 10.1128/mBio.03070-19. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  99. Moyes DL, Wilson D, Richardson JP, Mogavero S, Tang SX, Wernecke J, Höfs S, Gratacap RL, Robbins J, Runglall M, Murciano C, Blagojevic M, Thavaraj S, Förster TM, Hebecker B, Kasper L, Vizcay G, Iancu SI, Kichik N, Häder A, Kurzai O, Luo T, Krüger T, Kniemeyer O, Cota E, Bader O, Wheeler RT, Gutsmann T, Hube B, Naglik JR. 2016. Candidalysin, mukozal enfeksiyon için kritik olan bir mantar peptit toksinidir . Doğa 532 :64–68. doi: 10.1038/nature17625. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  100. Giacometti R, Kronberg F, Biondi RM, Passeron S. 2009. Candida albicans PKA'nın katalitik izoformları Tpk1 ve Tpk2, stres tepkisi ve glikojen depolamada gereksiz rollere sahiptir . Maya 26 :273–285. doi: 10.1002/yıl.1665. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  101. Birse CE, Irwin MY, Fonzi WA, Sypherd PS. 1993. Dimorfik patojen Candida albicans'ın hücre uzaması ile bağlantılı olarak ifade edilen bir gen olan ECE1'in klonlanması ve karakterizasyonu . Immun 61 :3648–3655'i enfekte edin. doi: 10.1128/iai.61.9.3648-3655.1993. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  102. Sherman F. 1991. Mayaya Başlarken . Yöntemler Enzymol 1991 :3–21. doi: 10.1016/0076-6879(91)94004-v. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  103. Herrero-de-Dios C, Day AM, Tillmann AT, Kastora SL, Stead D, Salgado PS, Quinn J, Brown AJP. 2018. Hog1 mitojenle aktive olan bir protein kinazın stres kaynaklı fosforilasyonu yerine redoks düzenlemesi, nitrozatif strese özgü çıktılarını modüle eder . mBio 9 :e02229-17. doi: 10.1128/mBio.02229-17. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                  104. Davies JQ, Gordon S. 2005. Kemirgen makrofajlarının izolasyonu ve kültürü, sayfa 91–104. Helgason CD, Miller CL (ed), Temel hücre kültürü protokollerinde . Humana Press, Totowa, NJ. [ Google Akademik ]

                  Yorum yap


                  • #10
                    Beta Glukan Hangi Hücreleri Harekete Geçirir?Faydaları Nelerdir?

                    Yorum yap


                    • #11
                      Beta Glukan Nedir ? Beta Glukan Faydaları Nelerdir?

                      Yorum yap


                      • #12
                        Beta Glukan Nedir Faydaları Nelerdir

                        Yorum yap


                        • #13
                          Lifli Gıdalar Nelerdir- Lifli Gıda il Beslenmenin Faydası Nedir- Beta Glukan Faydaları Nelerdir

                          Yorum yap


                          • #14
                            Üşütme ve Solunum Yolu Enfeksiyonlarına Karşı Beta Glukan


                            BAĞIŞIKLIK Sistemini Beta Glukan (İMUNEKS) ile Güçlendir, İmuneks (Beta Glukan) ile Sağlıklı Yaşam


                            Bağışıklık Sistemini Beta Glukan İle Güçlendirme. Beta Glukan'ın Etkileri


                            Kanser Tedavisinde Beta Glukan'ın Etkisi, Candida Mantarının Tedavisi Nedir

                            Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 15 September 2022, 14:57 ) değiştirilmiştir.

                            Yorum yap

                            Hazırlanıyor...
                            X