Duyuru

Collapse
No announcement yet.

Camu Camu, Kamu Kamu, Myrciaria dubia

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Camu Camu, Kamu Kamu, Myrciaria dubia

    Amazon’un Mucizevi Meyvesi Camu Camu

    Antioksidan mucizesi camu camu, Peru ile Brezilya arasında ki, Amazon Ormanları başta olmak üzere ormanlık alanlarda bulunan Mrytaceae(Mersingiller) ailesine mensup, küçük çalımsı bir ağaç meyvesi.

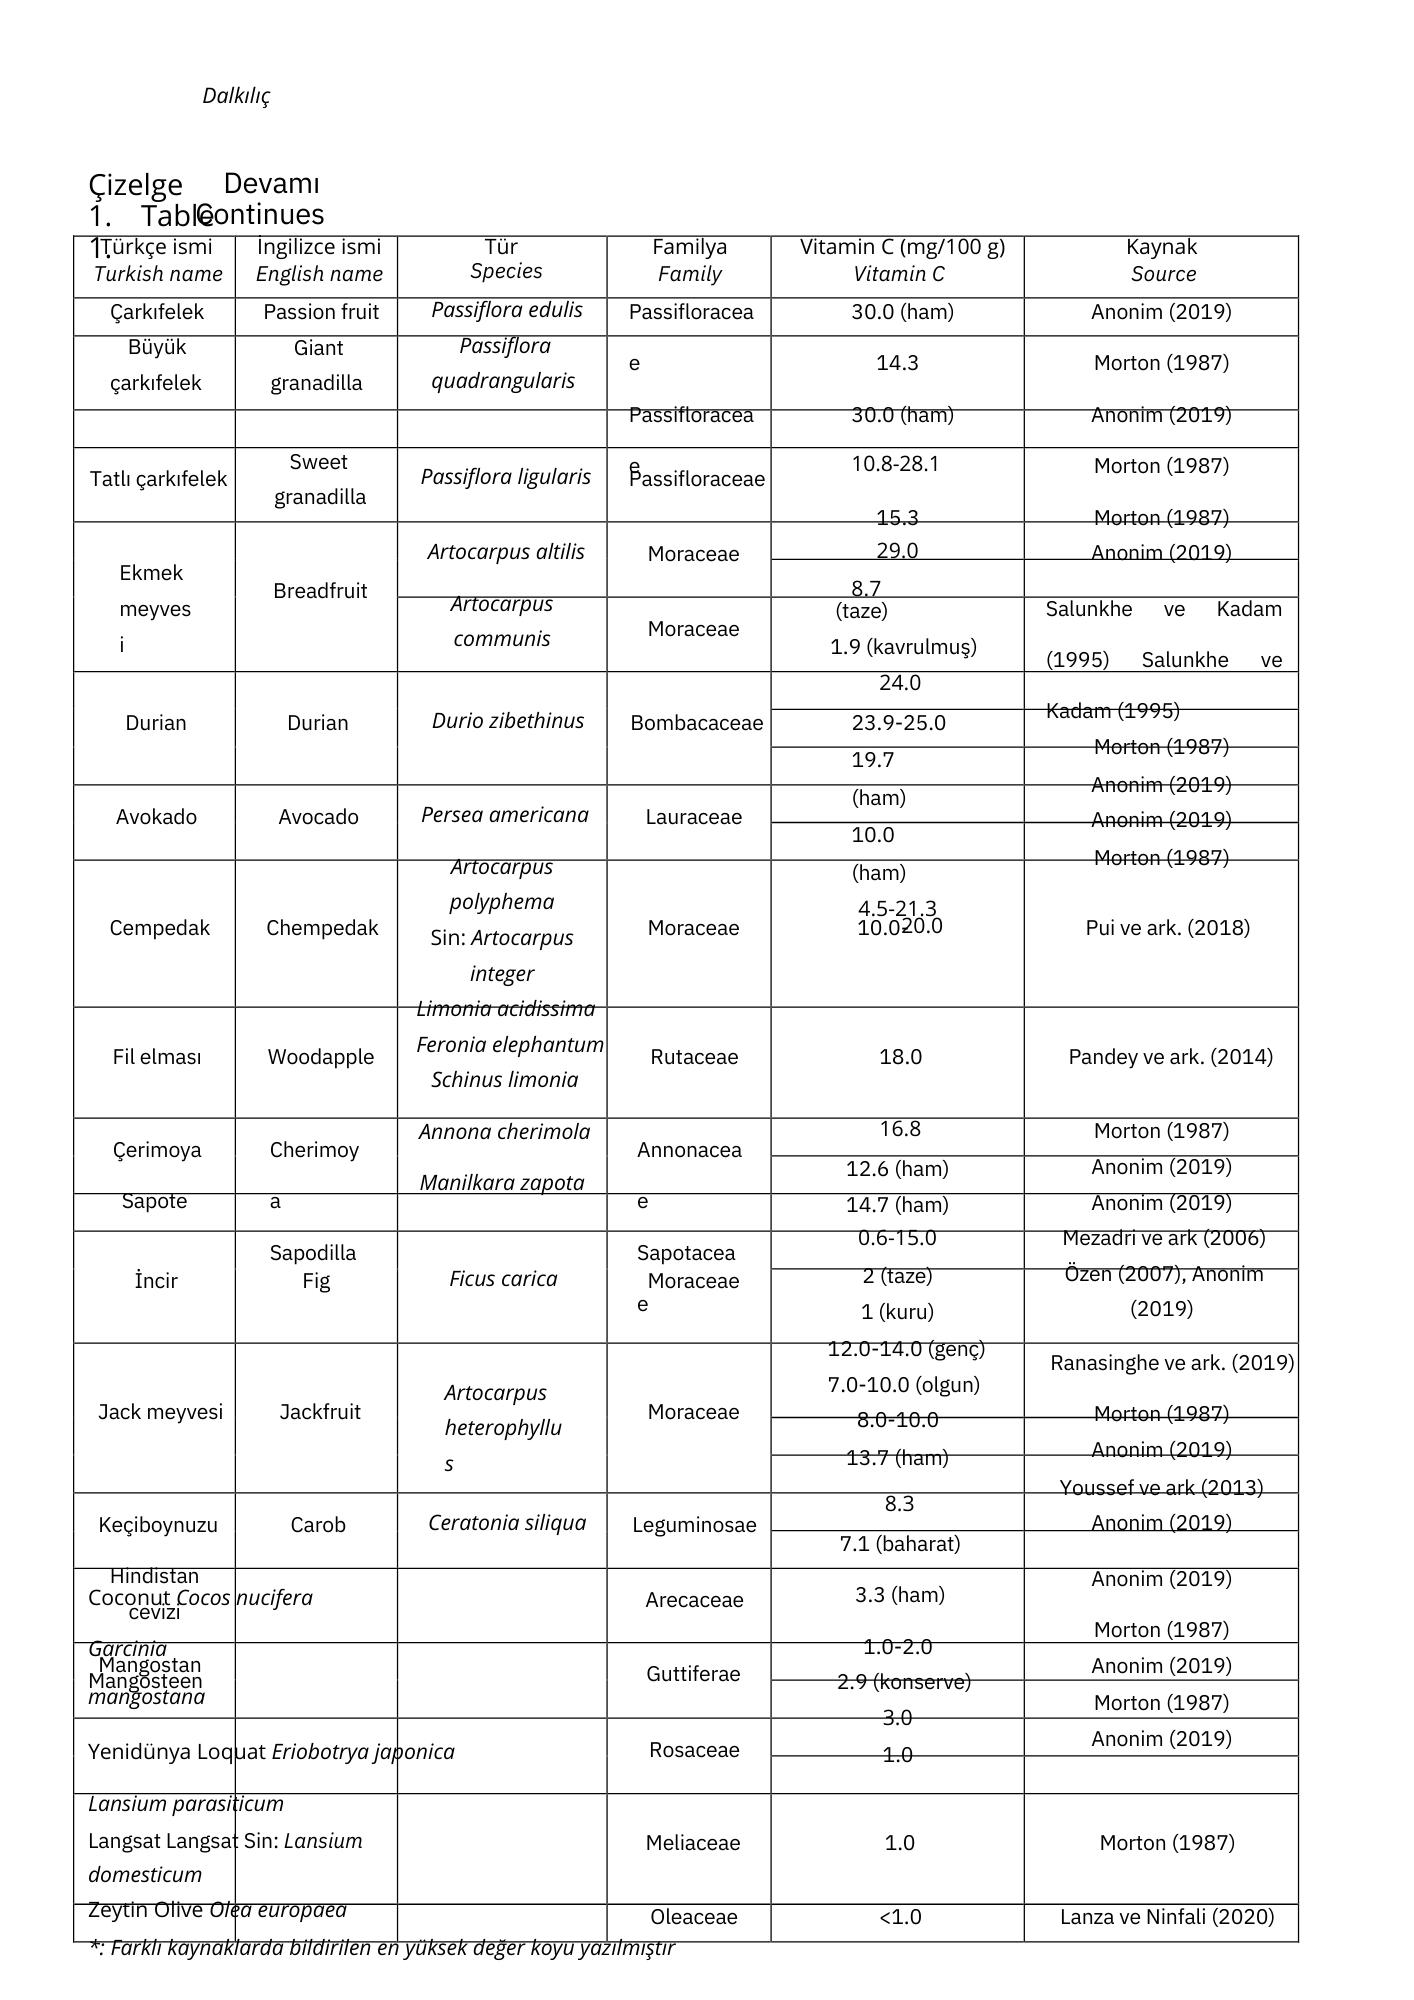
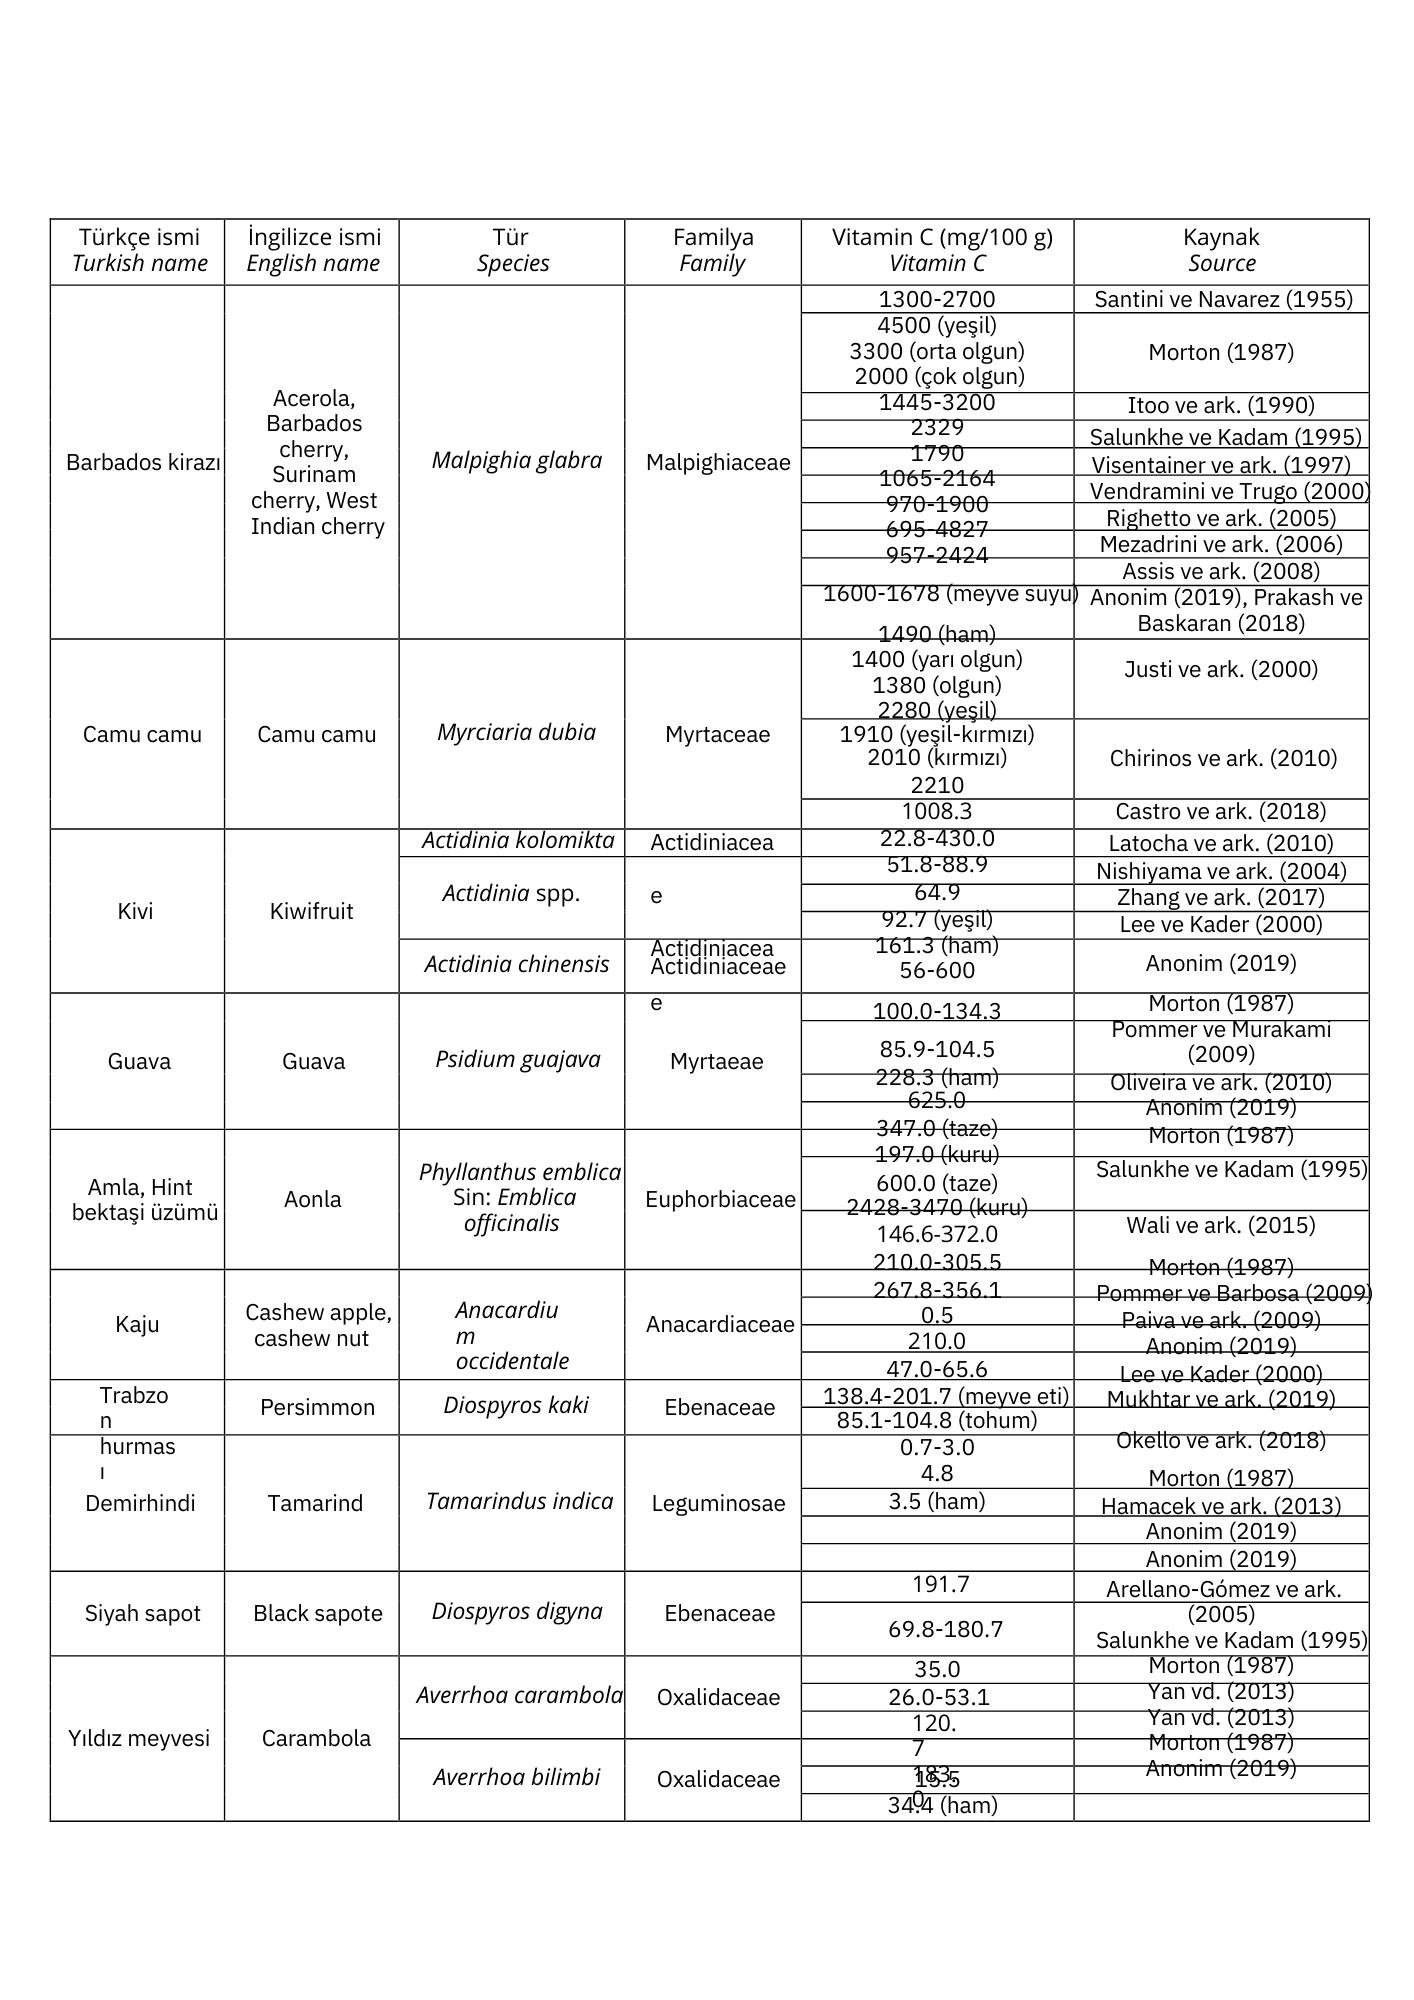
    Bu mucizevi meyve muza göre 200, limona göre 56, portakala göre ise 30-60 kat daha fazla C vitamini içermekte! Kırmızı mor kirazımsı bu meyveler, Brezilya’da C vitamini en yüksek besin olarak kabul edilmekte. Başta C vitamini olmak üzere beta-karoten ve fitokimyasallar gibi önemli antioksidan bileşikler bağışıklık sisteminizi güçlendirerek, enfeksiyonlara ve bakterilere karşı koruyor.

    İçeriğindeki bu C vitamini ve beta karoten sayesinde sadece vücudunuzun direncini artırmakla kalmıyor ayrıca katarakt ve glokom gibi yaşa bağlı körleşme riskini azaltıyor! Camu camu meyvesinin içerisindeki bu antioksidanlar kardiyovasküler hastalıklarla da savaşır nitelikte! Bu mucizevi meyve kan damarlarının güçlenmesini sağlayarak kalp krizini önleyici role sahip.

    Şeker hastaları dikkat! Yapılan bir çalışmaya göre camu camu meyvesi içeriğindeki antioksidan bileşikler sayesinde diyabete bağlı ortaya çıkan semptomları azaltmakta. Diyetinize ekleyeceğiniz bu meyve diyabete bağlı ortaya çıkan gözlerinizdeki, ayaklarınızdaki, sinir sistemi ve böbrek fonksiyonlarınızda oluşabilecek olan şikayetlerinizi önleyip, olan şikayetlerinizi de azaltmakta.

    Antioksidan kapasitesi oldukça yüksek olan bu meyvenin kansere karşı koruyucu özelliği var. İçeriğindeki antioksidanlar oksidatif stresi azaltarak birçok kanser çeşidinin oluşmasını önlemekte.

    Çağımızın büyük sorunlarından olan kronik yorgunluk sendromu, stres, depresyon problemleri yaşayanlar dikkat! Bu meyve tam size göre. Camu camu meyvesi yüksek C vitamini sayesinde bu problemleri azaltmakta etkili. Ayrıca ağız ve diş sağlığını koruyarak diş eti problemleri yaşamanızı önlemekte!

    Bu mucizevi meyve hücre yenilenmesini sağlayarak erken yaşlanmayı önler aynı zamanda yaşa bağlı kas dejenerasyonunu azaltarak cilt elastikiyetini korur. Bir başka deyişle daha sıkı bir cilde kavuşmuş olursunuz.

    Osteoartrit hastalığı olanlar da bu meyveyi tüketmeli! Camu camu meyvesi içeriğindeki yüksek antioksidan sayesinde normal kıkırdağın yapımında ve hasarlanmış kıkırdağın onarımında önemli role sahip. Yapılan araştırmalar antioksidanların bu hastalığın ilerleme riskini 3 kat azalttığını göstermekte.

    İçeriğindeki yüksek C vitamini ve antioksidan kapasitesi bu meyveyi sadece Amazonlar için değil tüm dünya için dikkate değer hale getirmekte! Camu camu posası, extratı ve meyve suyu başlangıçta özellikle Japonya ve Avrupa Birliği gibi ülkeler için temel ihraç pazarları arasındaydı. Ancak dünyanın her yerine ulaşımı kolay olsun diye camu camu meyvesi kurutuluıp toz haline getirilmekte. Camu camu bütün veya dilimlenmiş bir halde içeriğindeki besin bileşenlerden çok kaybetmeden düşük sıcaklıklarda kurutulurabilir. İçeriğindeki antioksidan kapasitesi oldukça yüksek olan bu meyve Amazon’dan sofralarımıza gelen mucizevi bir besin.

    Kurutulduktan sonra kırmızı turuncu bir toz haline gelen bu meyveyi tatlılarınıza, yoğurdunuzun içerisine, smoothielerinize ve içeceklerinize kolaylıkla karıştırıp rahat bir şekilde tüketebilirsiniz.

    C vitamini tabletlerinden daha fazla etkiye sahip bu doğal meyvenin bir tatlı kaşığı günlük alınması gereken C vitamini ihtiyacının %1180'ini karşılamakta. Amazon’dan sofralarımıza gelen bu mucizevi meyveyi siz de diyetinize ekleyerek enerjinizi artırın, bağışıklık sisteminizi güçlendirerek hastalıklara yakalanmayın!

  • #2


    Camu Camu Nedir?
    Camu camu nedir? Nasıl kullanılır? Camu camunun tadı nasıldır? Faydaları nelerdir? İşte, camu camu hakkında merak edilenler:
    Camu Camu, Amazon yağmur ormanları boyunca bataklıklarda yetişen, C vitamini açısından zengin ekşi bir meyvedir. Meyvenin kendisi yemek olarak yenmese veya yemek pişirmede kullanılmasa da, kurutulabilir ve bir dizi besin takviyesinin temeli olan bir toz haline getirilebilir.


    Camu Camu Nedir?
    Camu camu meyveleri, Peru, Brezilya, Bolivya, Kolombiya ve Ekvador'un yağmur ormanlarında yetişen Myrciaria dubia çalısının meyvesidir. Meyveler soluk sarıdan başlar ve olgunlaştıkça yavaş yavaş kırmızıya ve koyu mora dönüşür. C vitamini içeriği olgunlaştıkça azalır.

    Camu camu meyvelerinin ağırlığının yüzde 2 ila 3'ü C vitaminidir, bu da onu herhangi bir meyve veya sebzede ikinci en zengin C vitamini kaynağı yapar. Yerli Amazonların, meyveleri şekerle tatlandırılmış bir içecek yapmak için kullandıkları söylenir, ancak meyve, diğer mutfak kullanımları için çok ekşi ve asidiktir.

    Camu camu'nun antioksidan özelliklerine ilişkin, biri 20 katılımcılı, diğeri 12 katılımcılı bir çift küçük ölçekli çalışma, karışık sonuçlar verdi. 2008'de yapılan ilk çalışma, camu camu'nun antioksidan özelliklere sahip olabileceğini öne sürdü, ancak 2012'de yapılan ikincisi yoktu. İnsanlar üzerinde başka hiçbir çalışma yapılmamıştır ve hiçbir klinik çalışma yapılmamıştır.

    Yine de yüksek miktarda C vitamini içerdiği tartışılmaz bir gerçektir ve C vitamini temel bir besindir, bilinen bir antioksidandır ve bağışıklık sistemi için önemlidir. Meyve şeklinde yemektense, toz takviyelerin üzerindeki besin etiketleri, 1 çay kaşığı tozun (yaklaşık 5 gram) 682 mg C vitamini veya önerilen günlük alımın yüzde 760'ını karşılar.

    Camu Camu Nasıl Kullanılır?
    Camu camu genellikle meyvelerin kurutulması ve öğütülmesiyle yapılan bir toz şeklinde bulunur. Bunu kullanmak için, büyük olasılıkla bir smoothie'lere eklenebilir. Yoğurt, yulaf ezmesi, tahıl veya granola gibi yiyeceklerin üzerine serpin veya su, maden suyu veya çay ile karıştırarak tüketebilirsiniz.
    Ayrıca, camu camu içeren meyve suyu ürünleri mevcuttur. Bu şekersiz meyve suları saf camu camu suyu değildir, su ve diğer meyve suları ile seyreltilir. Tipik olarak, bunlar düz bir şekilde içmek yerine, bir smoothie veya maden suyuna karıştırılarak tüketilir.

    Tadı Nasıl?
    Geldiği meyve gibi, camu camu tozu da ekşi, ekşi bir tada sahiptir. Ek olarak, suda çözünmediği için kumlu bir kıvama sahip olabilir.

    Camu Camu Nereden Alınır?
    İnternette ve aktarlarda bulabilirsiniz. Camu camu tozu ve yukarıda belirtilen camu camu içeren meyve suyu ürünleri, sağlık gıda mağazalarında ve beslenme mağazalarında ve ayrıca diyet ve besin takviyeleri konusunda uzmanlaşmışmağazalarda ve interent sitelerinde bulunabilir.

    Camu Camu Nasıl Saklanır?
    Camu camu tozunu hava geçirmez kuru bir kapta saklayın ve satın aldığınız belirli üründe belirtilen son kullanma tarihine kadar kullanın. Çoğu ürün, soğutmanın gerekli olmadığını öne sürüyor, ancak şu ya da bu şekilde gösteren bir araştırma yok. Buzdolabında saklayabilirsiniz.

    Beslenme ve Faydaları
    Daha önce tartışıldığı gibi, camu camu tozu güçlü bir C vitamini kaynağıdır. Camu camu'daki C vitamininin vücut tarafından bir multivitamindeki C vitamininden daha verimli bir şekilde emilip emilmediği bilinmemektedir. Bununla birlikte, vücudun günde sadece 180 mg'a kadar C vitamini emdiği ve bundan fazlasını almanın azalan getiri sağladığı bilinmektedir.
    Ayrıca, C ve E vitaminleri gibi aşırı antioksidan alımının vücudunuzda daha fazla serbest radikal oluşmasına yol açabileceğini ve böylece en başta antioksidanları kullanarak yardım etmeyi umduğunuz durumu kötüleştirebileceğini belirtmekte fayda var.

    Yorum yap


    • #3
      Camu camu ( Myrciaria dubia ) ile tedavi, bağırsak mikrobiyotasını değiştirerek ve diyete bağlı obez farelerde enerji harcamasını artırarak obeziteyi önler.

      Fernando F. Anhê 1 2, Renato T Nachbar 1, Thibault V Varin 2, Jocelyn Trottier 3 4, Stephanie Dudonné 2, Melanie Le Barz 1 2, Perrine Feutry 2, Genevieve Pilon 1 2, Olivier Barbier 3 4, Yves Desjardins 2, Denis Roy 2, André Marette 1 2
      üyelikler yıkılmak üyelikler

      • 1Tıp Anabilim Dalı, Tıp Fakültesi, Québec Kalp ve Akciğer Enstitüsü Kardiyoloji Ekseni, Laval Üniversitesi, Québec, Kanada.
      • 2Beslenme ve Fonksiyonel Gıdalar Enstitüsü, Laval Üniversitesi, Québec, Kanada.
      • 3Moleküler Farmakoloji Laboratuvarı, Endokrinoloji-Nefroloji Ekseni, MUB-Québec Araştırma Merkezi, Québec, Kanada.
      • 4Eczacılık Fakültesi, Laval Üniversitesi, Québec, Kanada.
      Soyut

      Amaç: Meyve tüketimi, bağırsak mikrobiyotasında (GM) daha iyi sağlık ve daha yüksek bakteri çeşitliliği ile güçlü bir şekilde ilişkilidir. Camu camu ( Myrciaria dubia ), benzersiz bir fitokimyasal profili, güçlü antioksidan potansiyeli ve iddia edilen anti-enflamatuar potansiyeli olan bir Amazon meyvesidir.

      Tasarım: 16S rRNA gen tabanlı taksonomik profilleme ve fekal mikrobiyal transplantasyon (FMT) ile birleştirilmiş metabolik testleri kullanarak, ham bir camu camu (CC) ekstraktının obezite ve yüksek yağ/yüksek sükroz ile ilişkili immünometabolik bozukluklar üzerindeki etkisini değerlendirdik. (HFHS) ile beslenen fareler.

      Sonuçlar: HFHS ile beslenen farelerin CC ile tedavisi kilo alımını önledi, yağ birikimini azalttı ve metabolik enflamasyonu ve endotoksemiyi köreltti. CC ile tedavi edilen fareler, gelişmiş glikoz toleransı ve insülin duyarlılığı sergiledi ve ayrıca hepatik steatozdan tamamen korundu. Bu etkiler, membran safra asidi (BA) reseptörü TGR5'in mRNA ekspresyonu ile güçlü bir şekilde ilişkili olan, CC ile tedavi edilmiş farelerin kahverengi adipoz dokusunda (BAT) artan enerji harcaması ve ayrılma proteini 1 mRNA ekspresyonunun yukarı regülasyonu ile bağlantılıydı. Ayrıca, CC ile tedavi edilen fareler, değişen plazma BA havuzu boyutu ve bileşimi ve GM'de ciddi değişiklikler (örn., Akkermansia muciniphila'nın patlaması ve Lactobacillus'ta güçlü bir azalma) gösterdi.). CC ile tedavi edilen farelerin GM'si ile sulandırılan mikropsuz (GF) fareler, HFHS kontrollerinin FM'si ile kolonize edilen GF farelerine göre daha az ağırlık kazanmış ve daha yüksek enerji harcaması göstermiştir.

      Sonuç: Sonuçlarımız, CC'nin, GM'ye bağlı olan ve BA havuzu boyutu ve bileşimindeki büyük değişikliklerle bağlantılı bir mekanizma olan BAT aktivasyonu ve artan enerji harcaması yoluyla visseral ve karaciğer yağ birikimini önlediğini göstermektedir.

      Anahtar Kelimeler: akkermansia muciniphila; kahverengi yağ dokusu; insülin direnci; metabolik sendrom; polifenoller.

      Yorum yap


      • #4
        Myrciaria dubia Suyu (camu-camu) Farelerde Analjezik ve Antiödemojenik Aktiviteler Sergiler

        Francisco Carlos da Silva 1 2, Alessandra Hübner de Souza 2, Bruna Kempfer Bassoli 3, Gleiciane Alves Prates 1, Cintia Daudt 4, Dionatas Ulises de Oliveira Meneguetti 5, Aurea Pandolfo Corrêa 6, Iasmine Berbigier de Oliveira 6, Sandro de Vargas Schons 7, Maria Fernanda Pessano Fialho 8, Dione Silva Correa 2, Jaqueline Nascimento Picada 2, Alexandre de Barros Falcão Ferraz 2
        • 1Biyolojik Bilimler Bölümü, São Lucas Ji-Paraná Üniversite Merkezi (UniSL), Ji-Paraná, Brezilya.
        • 2Sağlığa Uygulanan Moleküler ve Hücre Biyolojisi Mezuniyet Sonrası Programı Bölümü, Brezilya Lutheran Üniversitesi (ULBRA), Canoas, Brezilya.
        • 3Tıp Bölümü, Federal Roraima Üniversitesi (UFRR), Boa Vista, Brezilya.
        • 4Doğa ve Biyolojik Bilimler Merkezi, Federal Acre Üniversitesi (UFAC), Rio Branco, Brezilya.
        • 5Fizyopharmakoloji Laboratuvarı, Batı Amazon Sağlık Bilimlerinde Mezuniyet Sonrası Programı, Federal Acre Üniversitesi (UFAC), Rio Branco, Brezilya.
        • 6Eczacılık Bölümü, Brezilya Lutheran Üniversitesi (ULBRA), Canoas, Brezilya.
        • 7Çevre Bilimleri Mezuniyet Sonrası Programı Bölümü, Rondônia Federal Üniversitesi (UNIR), Rolim de Moura, Brezilya.
        • 8Biyolojik Bilimler Mezuniyet Sonrası Programı Bölümü: Toksikolojik Biyokimya, Santa Maria Federal Üniversitesi, Santa Maria, Brezilya.
        Soyut

        Myrciaria dubia (Myrtaceae) meyvesi, yüksek C vitamini ve fenolik bileşikler seviyeleri nedeniyle geleneksel olarak yetersiz beslenmeyi tedavi etmek için kullanılır. Bileşimi nedeniyle bu bitki, ağrı bozuklukları için yeni doğal tedavi araştırmalarında çok umut vericidir. Bu çalışma , M. dubia suyunun fitokimyasal profilini analiz etmiş ve antinosiseptif ve antiödemojenik potansiyelini değerlendirmiştir. Fitokimyasal profil, M. dubia'nın oral antinosiseptif etkisi olan yüksek performanslı sıvı kromatografisi (HPLC) ile belirlendi.%50 meyve suyu (Md50) formalin, sıcak plaka ve Komple Freund Adjuvan testleri ile ve pençe ödemi ile antiödemojenik aktivite değerlendirildi. HPLC ana bileşikler olarak askorbik asit, rutin ve ellagik asidin varlığını ortaya çıkardı. Md50, formalin testinin akut ve kronik fazlarında antinosiseptif bir etki göstermiştir. Hot plate testinde, Md50 ayrıca 0,5 ila 6 saat arası bir antinosiseptif etki indükleyerek, hayvanların spontan hareketlerini değiştirmeden antinosiseptif (AĞRI KESİCİ) ve antiödemojenik potansiyel göstermiştir. Tüm protokoller, Brezilya Lutheran Üniversitesi Hayvanlarının kullanımı için Etik Kurulu tarafından sunulmuş ve onaylanmıştır (protokol No. 2013-30P).

        Anahtar Kelimeler: DFA; formalin; sıcak plaka; iltihaplanma; ağrı.

        Yorum yap


        • #5
          Doğal Polifenol Antitümör Aktivitesi Sağlar ve Bağırsak Mikrobiyotası Üzerindeki Etkileri Yoluyla Anti-PD-1 Direncini Aşar

          Meriem Messaoudene , 1 Reilly Pidgeon , 2 Corentin Richard , 1 Mayra Ponce , 1 Khoudia Diop , 1 Myriam Benlaifaoui , 1 Alexis Nolin-Lapalme , 1 Florent Cauchois , 1 Julie Malo , 1 Wiam Belkaid , 1 Stephane Isnard , 3 Yves Fradet , 4 Lharbi Dridi , 2 Dominique Velin , 5 Paul Oster , 5 Didier Raoult , 6 François Ghiringhelli , 7 Romain Boidot , 8, 9 Sandy Chevrier , 8 David T. Kysela , 10 Yves V. Brun , 10 Emilia Liana Falcone , 11, 12 Geneviève Pilon , 13 Florian Plaza Oñate , 14 Oscar Gitton-Quent , 14 Emmanuelle Le Chatelier , 14 Sylvere Durand , 15, 16 Guido Kroemer , 15, 16, 17 Arielle Elkrief ,1 André Marette , 13 Bastien Castagner , 2 ve Bertrand Routy 1, 18, *
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          1 Montreal Üniversitesi Hastanesi Araştırma Merkezi (CRCHUM), Montreal, Quebec, Kanada.
          2 Farmakoloji ve Tedavi Bilimleri Bölümü, Tıp ve Sağlık Bilimleri Fakültesi, McGill Üniversitesi, Montreal, Quebec, Kanada.
          3 Araştırma Enstitüsü, McGill Üniversitesi Sağlık Merkezi, Montreal, Quebec, Kanada.
          4 Centre de recherche du Québec MUB, Onkoloji Bölümü, Québec MUB, Université Laval, Québec City, Quebec, Kanada.
          5 Gastroenteroloji ve Hepatoloji Servisi, Centre Hospitalier Universitaire Vaudois, Lozan Üniversitesi, Lozan, İsviçre.
          6 Aix Marseille Université, IRD, AP-HM, MEPHI, IHU-Méditerranée Infection, Marsilya, Fransa.
          7 Tıbbi Onkoloji Bölümü, Merkez GF Leclerc, Dijon, Fransa.
          8 Moleküler Biyoloji Birimi, Tümör Biyolojisi ve Patolojisi Bölümü, Georges-François Leclerc Kanser Merkezi, UNICANCER, Dijon, Fransa.
          9 UMR CNRS 6302, Dijon, Fransa.
          10 Tıp Fakültesi, Mikrobiyoloji Bölümü, Infectiologie et Immunologie, Montreal Üniversitesi, Montreal, Quebec, Kanada.
          11 Bağışıklık ve Viral Enfeksiyonlar Departmanı, Montreal Clinical Research Institute (IRCM), Montreal, Quebec, Kanada.
          12 Tıp Bölümü, Montreal Üniversitesi, Montreal, Quebec, Kanada.
          13 Tıp Departmanı, Tıp Fakültesi, Québec Kalp ve Akciğer Enstitüsü Kardiyoloji Ekseni ve Beslenme ve Fonksiyonel Gıdalar Enstitüsü, Laval Üniversitesi, Québec City, Quebec, Kanada.
          14 Université Paris-Saclay, INRAE, MGP, Jouy-en-Josas, Fransa.
          15 Metabolomik ve Hücre Biyolojisi Platformları, Gustave Roussy Cancer Campus, Villejuif, Fransa.
          16 Centre de Recherche des Cordeliers, Equipe labellisée par la Ligue contre le kanser, Université de Paris, Sorbonne Université, INSERM U1138, Institut Universitaire de France, Paris, Fransa.
          17 Pôle de Biologie, Hôpital Européen Georges Pompidou, Paris, Fransa.
          18 Hematoloji-Onkoloji Bölümü, Tıp Bölümü, Montreal Üniversitesi Sağlık Merkezi (CHUM), Montreal, Quebec, Kanada.
          Sorumlu yazar.
          * Sorumlu Yazar: Bertrand Routy, Hemato-Onkoloji, Montreal Üniversitesi Hastane Araştırma Merkezi (CRCHUM), Montreal, Quebec H2X 3H8, Kanada. Telefon: 514-890-8000; E-posta: ac.laertnomu@ytuor.dnartreb
          873. sayfadaki 12. cildin yorumuna bakın. İlişkili Veriler

          Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
          Git: Soyut


          Kanser bağışıklık kontrol noktası inhibitörlerinin (ICI) aktivitesini iyileştirmek için bağırsak mikrobiyomunu manipüle etmeye yönelik çeşitli yaklaşımlar şu anda değerlendirme aşamasındadır. Burada, farelerde polifenol bakımından zengin meyve camu-camu (CC; Myrciaria dubia ) ile oral takviyenin, antitümör aktivitesine ve daha güçlü bir anti-PD-1 tepkisine dönüşen bağırsak mikrobiyal bileşimini değiştirdiğini gösteriyoruz . Bir ellagitannin olan castalagin'i CC'de aktif bileşik olarak belirledik. Etkili immünoterapötik tepkiler ( Ruminococcaceae ve Alistipes ) ile ilişkili bakteriler için zenginleştirilmiş ve CD8 + /FOXP3 + CD4 + 'yı iyileştiren castalagin'in oral uygulamasıtümör mikro ortamı içindeki oran. Ayrıca, castalagin, taurin-konjuge safra asitlerinde bir artışa yol açan metabolik değişiklikleri indüklemiştir. ICI'ye dirençli hastalardan desteklenen anti-PD-1 aktivitesini destekleyen farelere fekal mikrobiyota naklinin ardından oral castalagin takviyesi. Son olarak, castalagin'in Ruminococcus bromii'ye bağlandığını ve bir antikanser tepkisini desteklediğini bulduk . Toplamda, sonuçlarımız, castalagin'i, anti-PD-1 direncini atlatmak için bir prebiyotik görevi gören bir polifenol olarak tanımlar. önemi:


          Bir taneden izole edilen polifenol castalagin, komensal bakterilerle doğrudan etkileşimler yoluyla bir antitümör etkiye sahiptir, böylece tümör mikro ortamını yeniden programlamaktadır. Ek olarak, preklinik ICI'ye dirençli modellerde, castalagin, anti-PD-1'in etkinliğini yeniden tesis eder. Birlikte, bu sonuçlar, bir klinik araştırmanın parçası olarak castalagin'i test etmek için güçlü bir biyolojik gerekçe sağlar.

          Bu makale Bu Sayıda özelliğinde vurgulanmıştır, s. 873

          Git: giriiş


          İmmün kontrol noktası inhibitörlerinin (ICI) ortaya çıkışı, çoklu malignitelerde genel sağkalımı iyileştirmiştir ( 1-3 ). Bununla birlikte, birincil terapötik direnç önemli bir engel olmaya devam etmektedir. Direnç mekanizmalarının tanımlanması, PD-L1 ekspresyonu, tümör mikroçevre yapısı ve kansere karşı bağışıklık ayar noktasını veya eşiği belirleyen tümör mutasyon yükü dahil olmak üzere çeşitli faktörleri içerir ( 4, 5 ). Mikrop içermeyen (GF) farelerde yapılan deneylerle birleştirilen son metagenomik dizileme çalışmaları, bağırsak mikrobiyomunun bu kansere karşı bağışıklık ayar noktasının başka bir anahtar aracısı olarak hizmet ettiğini ortaya çıkardı ( 5, 6)). Klinik öncesi sonuçlar, bağırsak mikrobiyomunun antibiyotikler (ATB) tarafından modülasyonunun ICI direnci ile ilişkili olduğunu ve 11.000'den fazla hastadaki çok sayıda raporun, ATB'nin ICI etkinliği üzerindeki zararlı etkisini gösterdiğini ortaya koymaktadır (7-9 ) . Ek olarak, GF veya ATB ile tedavi edilen farelerde yapılan deneyler, kanserli hastaların dışkı numunelerinin kullanıldığı dışkı mikrobiyota transplantasyonunun (FMT), tümör implantasyonu ve ICI ile tedavi üzerine yanıt veren veya yanıt vermeyen hastaların klinik fenotipini yeniden ürettiğini ortaya çıkardı (10 ) .

          ICI'ye yatkın hastalarda bağırsak mikrobiyom profili, yüksek bağırsak bakteriyel çeşitliliğinin ve Ruminococcus , Akkermansia muciniphila ve Bifidobacterium gibi immünojenik bakterilerin varlığının daha güçlü bir CD8 + T-hücresi ve CD4 + Th1'e bağlı antitümör yanıtı ile ilişkili olduğunu ortaya çıkardı ve olumlu klinik sonuçlarla sonuçlandı ( 10-13 ). ICI'ye yanıt veren hastalardan alınan FMT'nin veya başlangıçta yanıt vermeyen (NR) hastalardan alınan FMT ile kolonize edilen farelerde A. muciniphila ile oral takviyenin ICI etkinliğini arttırdığı gösterilmiştir ( 10, 13 ). Ayrıca, 11 yararlı bağırsak bakterisinden oluşan bir konsorsiyum, daha güçlü bir CD8 + indüklemiştir.Fare kolonunda T-hücresi ve IFNy bağışıklık tepkisi ve geliştirilmiş ICI aktivitesi ( 14 ). Kanıtlar ayrıca, ICI başlangıcından önce ATB kullanımının bağırsak mikrobiyom çeşitliliğini azalttığını ve ilerlemiş küçük hücreli dışı akciğer kanseri (KHDAK) olan hastalarda Ruminococcaceae varlığını azalttığını ve olumsuz sonuçlara yol açtığını göstermiştir ( 15 ). Birlikte ele alındığında, bu gözlemler, bağırsak mikrobiyomunu ICI'ye terapötik bir adjuvan olarak kullanma çabalarını başlattı ( 16 ). Son zamanlarda, melanomdaki ilk prensip kanıtı FMT klinik deneyleri rapor edildi ve FMT, probiyotikler veya hedeflenen diyet değişikliklerini ICI ile kombinasyon halinde değerlendiren birkaç kişi daha devam ediyor (17, 18) .). Bununla birlikte, konakçı bağırsak mikrobiyomunu olumlu yönde değiştiren bileşikler olan prebiyotiklerin kullanımı, ICI etkinliğini artırmak için mikrobiyom temelli bir müdahale olarak henüz araştırılmamıştır. Myrciaria dubia olarak da bilinen Camu-camu (CC), çeşitli fitokimyasallar içeren bir Amazon meyvesidir ve bağırsakta A. muciniphila ve Bifidobacterium bolluğunu artırarak farelerde obezite ve ilgili metabolik bozukluklara karşı koruyucu prebiyotik etkiler gösterdiği gösterilmiştir. ( 19 ). Burada, CC'nin prebiyotik etkisinin bağırsak mikrobiyomunu değiştirmek ve antitümör aktiviteyi iyileştirmek için kullanılıp kullanılamayacağını değerlendirdik.

          Git: Sonuçlar

          CC'nin Antitümör Aktivitesi Mikrobiyoma Bağımlıdır ve Anti-PD-1 Direncini Aşar


          Oral CC takviyesinin antitümör etkisini değerlendirmek için, spesifik patojen içermeyen (SPF) fareler, MCA-205 sarkom (ICI-duyarlı) tümör aşılamasından (10) sonra günlük oral CC sondası aldı ve intraperitoneal olarak anti-PD-1 ile tedavi edildi . (αPD-1) veya her üç günde bir αPD-1 (IsoPD-1) için izotip kontrolü. Su/IsoPD-1 ile karşılaştırıldığında CC/IsoPD-1 ve su/αPD-1'in benzer bir terapötik etkinliği gözlemledik, oysa CC ve αPD-1 kombinasyonu, her bir tedaviye kıyasla tümör büyümesinin daha fazla inhibisyonuna yol açtı (Şekil 1A). Daha sonra CC'yi bir aPD-1'e dirençli E0771 meme kanseri tümörü fare modelinde test ettik ( 20 ) ve tek başına aPD-1'in bu modelde herhangi bir antitümör aktivite göstermediğini doğruladık (Şekil 1B). CC/IsoPD-1 minimal antitümör aktivite gösterirken, CC/αPD-1 kombinasyonu aPD-1 aktivitesini arttırdı. Bu ilaç kombinasyonları, kilo kaybı veya ishal gözlenmeden hayvanlar tarafından iyi tolere edildi (Ek Şekil S1A). CC'nin tek başına veya aPD-1 ile kombinasyon halinde terapötik potansiyelini daha fazla araştırmak için, dört yanıt veren (R) hastadan ve aPD-1'e uygun gelişmiş NSCLC'ye sahip dört NR hastasından FMT uygulayarak ATB ile tedavi edilen fareleri yeniden kolonize ettik (Ek Tablo S1) . Bu "avatar" fare modellerinde MCA-205 tümörleri aşılandı ve fareler, aPD-1 olsun veya olmasın CC veya suyla tedavi edildi (Şekil 1C). Daha önce yayınlandığı gibi, NR hastalarından alınan FMT, αPD-1'e direnç verirken, R hastalarından alınan FMT, αPD-1 antitümör etkisini destekledi (Şekil 1D; ref. 10 ). FMT NR avatar farelerinde, CC/IsoPD-1'in oral takviyesi, bir antitümör etkisine neden oldu. Ayrıca CC/aPD-1 kombinasyonu, su/aPD-1 veya CC/IsoPD-1 ile karşılaştırıldığında tümör tepkisini daha da geliştirdi. Tersine, FMT R avatar farelerinde, tek başına veya aPD-1 ile kombinasyon halinde CC, su/aPD-1 ile karşılaştırıldığında antitümör tepkisini daha fazla artırmadı (Şekil 1D).
          Şekil 1. CC takviyesi, mikrobiyom bağımlı olan ve NSCLC'li NR hastalarından FMT tarafından sağlanan farelerde PD-1 direncini aşan antitümör aktivitesi ile ilişkilidir.  A ve B, SPF C57BL/6 farelerinde sıralı PD-1 veya IsoPD-1 enjeksiyonlarından ve CC veya su ile günlük oral sondadan sonra tümör büyüme kinetiği (A) MCA-205 sarkomu için gösterilmektedir (n = 15 fare/grup) ve (B) E0771 meme kanseri (n = 10 fare/grup).  C, Avatar fare deneylerinin deneysel tasarımı.  NSCLC'li NR ve R hastalarından alınan dışkı numunelerinden alınan FMT, GF C57BL/6 farelerinde ayrı ayrı veya SPF C57BL/6 farelerinde 3 günlük ATB'den sonra gerçekleştirildi.  İki hafta sonra, MCA-205 tümörleri aşılandı ve ardışık PD-1 veya IsoPD-1 enjeksiyonları ile kombinasyon halinde CC veya su ile günlük sonda uygulandı.  D,  Her bir CC ve su grubu için dört NR (NR1 2, 4 5) ve dört R (R1 4) grubundan FMT sonrası kurbanda ortalama tümör boyutu SEM'in havuzlanmış analizi.  Her sembol bir fareyi temsil eder.  E, GF koşullarında yetiştirilen ve CC veya su ile günlük oral sonda ile beslenen farelerde MCA-205 tümör kinetiği (n = 5 fare/grup).  F, Daha önce CC ile desteklenmiş fare dışkısı ile günlük FMT ile kombinasyon halinde PD-1 veya IsoPD-1 ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu.  Her daire bir fareyi temsil eder.  SEM'in tüm deneylerde temsil edildiği anlamına gelir.  ns, önemsiz;  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Daha önce CC ile desteklenmiş fare dışkısı ile günlük FMT ile kombinasyon halinde PD-1 veya IsoPD-1 ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu.  Her daire bir fareyi temsil eder.  SEM'in tüm deneylerde temsil edildiği anlamına gelir.  ns, önemsiz;  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Daha önce CC ile desteklenmiş fare dışkısı ile günlük FMT ile kombinasyon halinde PD-1 veya IsoPD-1 ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu.  Her daire bir fareyi temsil eder.  SEM'in tüm deneylerde temsil edildiği anlamına gelir.  ns, önemsiz;  *, P 0.05;  **, P 0.01;  ***, P 0.001.
          Şekil 1.
          CC takviyesi, mikrobiyom bağımlı olan ve NSCLC'li NR hastalarından FMT tarafından sağlanan farelerde aPD-1 direncini aşan antitümör aktivitesi ile ilişkilidir. A ve B, ( A ) MCA-205 sarkomu ( n = 15 fare/grup) için αPD-1 veya IsoPD-1'in sıralı enjeksiyonları ve CC veya suyla günlük oral sondadan sonra SPF C57BL/6 farelerinde tümör büyüme kinetiği gösterilmektedir. ve ( B ) E0771 meme kanseri ( n = 10 fare/grup). C,Avatar fare deneylerinin deneysel tasarımı. NSCLC'li NR ve R hastalarından alınan dışkı numunelerinden alınan FMT, GF C57BL/6 farelerinde ayrı ayrı veya SPF C57BL/6 farelerinde 3 günlük ATB'den sonra gerçekleştirildi. İki hafta sonra, MCA-205 tümörleri aşılandı ve ardışık aPD-1 veya IsoPD-1 enjeksiyonları ile kombinasyon halinde CC veya su ile günlük sonda uygulandı. D, Her bir CC ve su grubu için dört NR (NR1–2, 4–5) ve dört R (R1–4) grubundan FMT sonrası fedakarlıkta ortalama tümör boyutu ± SEM'in havuzlanmış analizi. Her sembol bir fareyi temsil eder. E, GF koşullarında yetiştirilen ve CC veya su ile günlük oral sonda ile beslenen farelerde MCA-205 tümör kinetiği ( n = 5 fare/grup). F,Daha önce CC ile takviye edilmiş fare dışkısı ile günlük FMT ile kombinasyon halinde aPD-1 veya IsoPD-1 ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu. Her daire bir fareyi temsil eder. Ortalama ± SEM, tüm deneylerde temsil edilir. ns, önemsiz; *, P < 0.05; **, P < 0.01; ***, P < 0.001.

          CC'nin antitümör etkisinin bağırsak mikrobiyotasına bağlı olduğu hipotezimizi test etmek için üç farklı strateji kullandık. İlk olarak, GF koşullarında yetiştirilen farelerde, CC oral takviyesinin antitümör aktivitesi olmadığını gösterdik (Şekil 1E). İkincisi, CC tedavisi sırasında geniş spektrumlu ATB ile farelerin tedavisi, CC tarafından sağlanan antitümör aktiviteyi tehlikeye attı (Ek Şekil S1B). Üçüncüsü, MCA-205 aşılamasından sonraki 14 gün boyunca SPF farelerinde günlük FMT yapmak için CC ile veya CC olmadan tedavi edilen farelerden alınan dışkı örneklerini kullandık ( 10, 21 ). Yalnızca CC ile tedavi edilen farelerden alınan FMT, aPD-1 aktivitesini daha da geliştirdi (Şekil 1F). Bu deneyler, CC'nin antitümör aktivitesinin mikrobiyota bağımlı olduğunu göstermektedir. CC, Mikrobiyom Çeşitliliğini Artırır ve Mikrobiyomun Kompozisyonunu Yararlı Bir Şekilde Değiştirir


          İlk olarak, herhangi bir CC ± αPD-1 tedavisinden önce R veya NR'den FMT alanlar arasındaki avatar fare modellerimizde mikrobiyom bileşimindeki farklılıkları tanımlamaya çalıştık. 16S rRNA'ya dayalı mikrobiyom profili, aPD-1 aktivitesine çevrilen R'den FMT'nin, NR'den FMT alan farelerle karşılaştırıldığında daha büyük alfa çeşitliliği ve farklı objektif kümelerle ilişkili olduğunu ortaya çıkardı (aPD-1'e dirençli; Ek Şekil S2A ve S2B). Ruminococcaceae UBA1819 , Christensenellaceae R-7 grubu, Paraprevotella , Bifidobacterium ve Oscillospiraceae UCG-003'ün aşılaması, R'den FMT uygulanan ve su/aPD-1'e duyarlı tümörleri olan farelerde zenginleştirildi; oysaLachnospiraceae UCG-006 , NK4B4 ve FCS020 , NR'den FMT'de daha boldu (Ek Şekil S2C). Toplamda, bu sonuçlar murin deneylerimizde hasta seviyesindeki αPD-1 yanıtıyla ilişkili spesifik bakterilerin önemini doğrulamaktadır.

          CC'nin bağırsak mikrobiyom bileşimi üzerindeki etkisini aydınlatmak için, hasta FMT'si olmadan CC ile tedavi edilen MCA-205 murin modelindeki mikrobiyota bileşimini karakterize ettik (Şekil 1A). CC tedavisi, aPD-1 tedavisinden bağımsız olarak su/IsoPD-1 ile karşılaştırıldığında artan alfa çeşitliliği ile ilişkilendirilmiştir (Şekil 2A; Ek Şekil S3A). Evrensel 16S rRNA gen primerlerine sahip qRT-PCR, CC grubunda suyla karşılaştırıldığında bakteri bolluğunun arttığını doğruladı (Ek Şekil S3B). Bray-Curtis indeksi, CC ile oral sondanın, CC öncesi tedaviye kıyasla farklı bakteri kümelerine yol açtığını ortaya koydu ( P = 0.006; Ek Şekil S3C), oysa su/αPD-1 ile oral sonda, mikrobiyomun belirgin şekilde ayrılmadığını gösterdi. kümeler ( P = 0.16; Ek Şekil S3D). Diferansiyel bolluk analizi, cins seviyesindeki Ruminococcus bakterilerinin, su gruplarına kıyasla CC gruplarında aşırı temsil edildiğini gösterdi (düzeltilmiş P < 0.05;Şekil 2B). Ayrıca Ruminococcus ve Turicibacter , su/IsoPD-1 grubuyla karşılaştırıldığında hem CC/IsoPD-1 hem de CC/αPD-1 gruplarında tutarlı bir şekilde daha bol olan tek cinsti (Ek Şekil S3E ve S3F). Buna paralel olarak, E0771 tümör modelinde 16S rRNA dizilimi kullanılarak bağırsak mikrobiyomunun profilinin çıkarılması, Ruminococcaceae UBA1819 , Turicibacter , Parasutterella , Ruminococcus , A. muciniphila'nın (düzeltilmiş P < 0.05) yanı sıra Christensenellaceae R-7 grubu ve Oscillospiraceae UCG-005'in olduğunu gösterdi. ( P< 0.05), CC/αPD-1 ile tedavi edilen farelerde su/αPD-1 ile karşılaştırıldığında artmıştır (Şekil 2C).
          Şekil 2. CC'nin mikrobiyom kompozisyonu üzerindeki etkisi ve CD8+ T-hücresi antitümör aktivitesi ile ilişkisi.  A, MCA-205 deneylerinde dört gruptan farelerden alınan dışkı örneklerinin 16S rRNA analizi ve her gruptaki amplikon sekans varyantı (ASV) sayısıyla ölçülen alfa çeşitliliğinin temsili.  B ve C, MCA-205 modelindeki (B) havuzlanmış CC ile suyu ( PD-1 ve IsoPD-1) gruplarını ve (C) su/ PD-1 ile CC/'yi karşılaştıran diferansiyel bolluk analizinin volkan arsa gösterimi E0771 modelinde PD-1 grupları (sırasıyla n = 10 ve 5 fare/grup).  Her grupta zenginleştirilmiş bakteriler, ayarlanmış P değeri (dolgu şekli sembolü) ve P değeri (dolgu şekli sembolü yok; yanlış keşif oranı: 0,05) kullanılarak temsil edilir.  D,  Dört deney grubundaki (n = 10 fare/grup) MCA-205 TIL'lerde CD8+/FOXP3+CD4+ T hücreleri ve CD8+ T merkezi bellek (TCM) hücresi (CD45RB CD62L+) alt popülasyonlarının oranının akış sitometri analizi.  E, Anti-CD8 ( CD8) tükenmesinin veya izotip kontrolünün (IsoCD8), PD-1 veya izotip kontrolü ile tedavi edilen veya edilmeyen CC'nin günlük oral sondası (n = 5 fare/grup) ile MCA-205 tümör büyüme kinetiği üzerindeki etkileri .  F, Pairwise Spearman, MCA-205 deneyinde pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve eşleşen tümör boyutu ile CC/IsoPD-1 açısından zenginleştirilmiş önemli ölçüde farklı bakteriler ile su/IsoPD-1 grupları arasındaki korelasyon ısı haritasını sıralar.  MFI, ortalama floresan yoğunluğu;  TEM, T efektör hafızası.  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Anti-CD8 ( CD8) tükenmesinin veya izotip kontrolünün (IsoCD8), PD-1 veya izotip kontrolü ile tedavi edilen veya edilmeyen CC'nin günlük oral sondası (n = 5 fare/grup) ile MCA-205 tümör büyüme kinetiği üzerindeki etkileri.  F, Pairwise Spearman, MCA-205 deneyinde pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve eşleşen tümör boyutu ile CC/IsoPD-1 açısından zenginleştirilmiş önemli ölçüde farklı bakteriler ile su/IsoPD-1 grupları arasındaki korelasyon ısı haritasını sıralar.  MFI, ortalama floresan yoğunluğu;  TEM, T efektör hafızası.  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Anti-CD8 ( CD8) tükenmesinin veya izotip kontrolünün (IsoCD8), PD-1 veya izotip kontrolü ile tedavi edilen veya edilmeyen CC'nin günlük oral sondası (n = 5 fare/grup) ile MCA-205 tümör büyüme kinetiği üzerindeki etkileri.  F, Pairwise Spearman, MCA-205 deneyinde pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve eşleşen tümör boyutu ile CC/IsoPD-1 açısından zenginleştirilmiş önemli ölçüde farklı bakteriler ile su/IsoPD-1 grupları arasındaki korelasyon ısı haritasını sıralar.  MFI, ortalama floresan yoğunluğu;  TEM, T efektör hafızası.  *, P 0.05;  **, P 0.01;  ***, P 0.001.  pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve MCA-205 deneyinde eşleşen tümör boyutuna sahip su/IsoPD-1 grupları.  MFI, ortalama floresan yoğunluğu;  TEM, T efektör hafızası.  *, P 0.05;  **, P 0.01;  ***, P 0.001.  pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve MCA-205 deneyinde eşleşen tümör boyutuna sahip su/IsoPD-1 grupları.  MFI, ortalama floresan yoğunluğu;  TEM, T efektör hafızası.  *, P 0.05;  **, P 0.01;  ***, P 0.001.
          Şekil 2.
          CC'nin mikrobiyom bileşimi üzerindeki etkisi ve CD8 + T-hücresi antitümör aktivitesi ile ilişkisi. A, MCA-205 deneylerinde dört gruptan farelerden alınan dışkı örneklerinin 16S rRNA analizi ve her gruptaki amplikon sekans varyantı (ASV) sayısıyla ölçülen alfa çeşitliliğinin temsili. B ve C, MCA-205 modelinde havuzlanmış CC ile su (αPD-1 ve IsoPD-1) gruplarını ve ( C ) su/αPD-1 ile CC/'yi karşılaştıran ( B ) diferansiyel bolluk analizinin volkan arsa gösterimi E0771 modelinde aPD-1 grupları ( sırasıyla n = 10 ve 5 fare/grup). Her grupta zenginleştirilmiş bakteriler, ayarlanmış P kullanılarak temsil edilir.değeri (dolgu şekli sembolü) ve P değeri (dolgu şekli sembolü yok; yanlış bulma oranı: 0,05). D, Dört deney grubundaki ( n = 10 fare ) MCA-205 TIL'lerdeki CD8 + /FOXP3 + CD4 + T hücreleri ve CD8 + T merkezi bellek (TCM) hücresi (CD45RB - CD62L + ) alt popülasyonlarının oranının akış sitometrisi analizi /grup). E, Anti-CD8 (αCD8) tükenmesinin veya izotip kontrolünün (IsoCD8) , aPD-1 veya izotip kontrolü ile tedavi edilen veya edilmeyen CC'nin günlük oral sondası ( n = 5 fare/ grup ) ile MCA-205 tümör büyüme kinetiği üzerindeki etkileri . F,Çift yönlü Spearman, CC/IsoPD-1 açısından zenginleştirilmiş önemli ölçüde farklı bakteriler ile su/IsoPD-1 grupları arasında pozitif korelasyonlu TIL'ler veya splenosit sitometrisi ve MCA-205 deneyinde eşleşen tümör boyutu arasındaki korelasyon ısı haritasını sıralar. MFI, ortalama floresan yoğunluğu; TEM, T efektör hafızası. *, P < 0.05; **, P < 0.01; ***, P < 0.001.

          CC'nin mikrobiyomu nasıl değiştirdiğini daha fazla tanımlamak için, FMT alan "avatar" farelerin dışkı örneklerini ve ardından CC ± IsoPD-1 ile tedaviyi analiz ettik. Cins düzeyinde, CC/IsoPD-1'in FMT NR avatar farelerine eklenmesi, Bifidobacterium'un ( P < 0.001) ve Ruminococcaceae ve Ruminococcaceae UCG-009'un ( P = 0.054 ve P = 0.056 ) nispi bolluğundaki bir artışla ilişkilendirildi. , sırasıyla; Ek Tablo S2).

          Toplamda, bu sonuçlar, CC'nin, tümör modeli ve aPD-1 uygulamasından bağımsız olarak, bağırsak mikrobiyota bileşiminde bir kaymaya neden olduğunu göstermektedir. Bu sonuçlar, R hastalarından alınan FMT açısından zenginleştirilmiş bakteriler ile CC alan farelerinkiler arasındaki ortaklıkları vurguladı. CC'nin Antitümör Aktivitesi CD8 + T-hücresine Bağımlıdır ve İmmünojenik Bakteriyel Türlerle İlişkilidir


          Daha sonra, tümör infiltre eden lenfositler (TIL) içindeki akış sitometrisi vekil belirteçlerini değerlendirerek CC'nin immün güçlendirici etkisini karakterize ettik. FMT'siz MCA-205 modelinde (Şekil 1A), analizler, antitümör aktivite gösteren üç gruptaki (CC/IsoPD-1, CC/αPD-1 veya su/αPD-1) CD8 + /FOXP3 + CD4 + düzenleyici T hücrelerinin (Treg) oranının su/IsoPD-1 ile karşılaştırıldığında arttı (Şekil 2D). TIL'lerin alt popülasyonlarını ayrıca inceledik ve su/IsoPD-1 ile karşılaştırıldığında CC/IsoPD-1'in merkezi bellek (TCM) CD8 + T hücrelerini (CD45RB - CD62L + ) arttırdığını bulduk. CC ile ilişkili antitümör aktivitesine CD8 + T hücrelerinin aracılık ettiğini doğrulamak için, CD8 + T-hücresi alt popülasyonunu tüketmek için MCA-205 taşıyan farelerde CC ile kombinasyon halinde bir anti-CD8 + monoklonal antikor uyguladık . Sonuçlar, CC/IsoCD8 + (kontrol) ile karşılaştırıldığında tümör büyümesinin arttığını gösterdi; bu, CC'nin mikrobiyom aracılı etkisinin CD8 + T-hücresine bağımlı olduğunu gösterir (Şekil 2E).

          CC ile ilişkili tümör boyutu üzerindeki mikrobiyom ve sistemik bağışıklık tepkisi arasındaki etkileşimleri daha da araştırdık. MCA-205 murin modelinde, CC/IsoPD-1 açısından zenginleştirilmiş bakteriler ile su/IsoPD-1 grupları arasında parametrik olmayan Spearman korelasyonları kullanılarak ikili karşılaştırmalar yapıldı ve tümör içi sitometri immün belirteçleri ve tümör boyutu ile karakterize edildi. MCA-205 TIL'lerde PD-L1 + CD8 + T hücrelerinin, TCM CD8 + hücrelerinin oranındaki ve CD8 + /FOXP3 + CD4 + T hücrelerinin oranındaki artış , Ruminococcus ve Oscillospiraceae gibi CC ile zenginleştirilmiş bakterilerle ilişkilendirildi . ve Lactobacillus'un aşağı regülasyonuve Psödoflavonifraktör (Şekil 2F). Benzer şekilde, CC/IsoPD-1 grubunun splenositlerinde, CD8 + T hücreleri ve CD8 + /FOXP3 + CD4 + T-hücre oranı, su/IsoPD-1 ile karşılaştırıldığında Ruminoccocus ve Oscillospiraceae UCG-005 ile koreledir.

          Paralel olarak, tedavi sonrası E0771 tümör modelindeki TIL'leri analiz ettik. CC , su/aPD-1 ile karşılaştırıldığında ICOS + CD8 + T hücrelerinin ortalama flüoresan yoğunluğundaki bir artışla temsil edilen intratümöral CD8 + T hücrelerinin aktivasyonunu indükleyen aPD-1 ile birleştirildi ( Ek Şekil S4A). Su/αPD-1 ve CC/αPD-1 gruplarında yukarı regüle edilen bakteriler arasında immün belirteçler ve tümör boyutu açısından Spearman sıra korelasyonları yapıldı. Sonuçlar ayrıca CD8 + /FOXP3 + CD4 + T-hücre oranı ile ICOS + FOXP3 - CD4 + yukarı regülasyonu arasında pozitif bir korelasyon gösterdi.T hücre infiltrasyonu. Bu , azaltılmış bir tümör boyutu ile ilişkili olan Ruminococcus , Christensenellaceae R-7 grubu, Bilophila ve A. muciniphila'nın bolluğu ile ilişkilendirildi (Ek Şekil S4B). Castalagin, Antitümör Etkisinden Sorumlu CC'den Biyoaktif Polifenol Molekülüdür


          CC, tümü prebiyotik özelliklerine katkıda bulunabilen çoklu polifenoller dahil 50'den fazla bileşikten oluşur ( 22 ). CC'nin gözlenen mikrobiyom bağımlı antitümör aktivitesinden sorumlu biyoaktif molekülü tanımlamayı amaçladık. Yüksek performanslı sıvı kromatografisi (HPLC) kullanarak, ham özü CC'den moleküler polaritesine göre ayırdık: polar (P), orta polarite (MP) ve polar olmayan (NP) ve ayrıca çözünmeyen bir fraksiyon (INS;Şekil 3A; Ek Şekil S5A ve S5B). Bu dört fraksiyon, daha önce tarif edildiği ve CC ve su ile karşılaştırıldığı gibi MCA-205 tümör modelinde oral takviye ile bağımsız olarak verildi. Dört farklı fraksiyon arasında sadece P fraksiyonu, CC'ye benzer bir antitümör etki ile ilişkilendirildi (Şekil 3B; Ek Şekil S6). Ayrıca P fraksiyonunu alıkonma sürelerine göre (P1 – P4) dört alt fraksiyona ayırdık. P1 fraksiyonu çoğunlukla askorbik asitten oluşuyordu; P2, polifenol veskalagin ve gallik asitten oluşuyordu; P3, polifenol castalagin'den oluşuyordu; ve P4, farklı kompleks polifenollerden oluşuyordu (Ek Şekil S7A ve S7B). Bu dört alt fraksiyonu MCA-205 modelinde test ettik ve %95 castalagin olan P3'ün CC'ye benzer bir antitümör etkisi ile ilişkili tek fraksiyon olduğunu bulduk (Ek Şekil S7C).
          Şekil 3. Castalagin'in benzer antitümör aktiviteye sahip CC'nin biyoaktif bileşiği olarak tanımlanması.  A, CC fraksiyonasyon prosedürünün şeması ve CC'den biyoaktif fraksiyonların izolasyonunu gösteren kromatogramların özeti ( = 254 nm): Polar (P), orta polar (MP) ve polar olmayan (NP) fraksiyonları içeren CC ekstraktı (üst kromatogram) .  P14 ve polar altfraksiyon 3'ü (P3; alt kromatogram) içeren polar fraksiyonun (orta kromatogram) gösterimi.  B, CC veya P fraksiyonu (n = 10 fare/grup) ile günlük oral sonda ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu.  C, CC, standart konsantrasyonda castalagin (fare başına 0.85 mg/kg) veya su (n = 10 fare/grup) ile günlük oral takviyeden sonra MCA-205 modelinde kurban edilen tümör boyutu.  D,  Sıralı PD-1 veya IsoPD-1 enjeksiyonlarından ve standart konsantrasyonda (fare başına 0.85 mg/kg; n = 10 fare/grup) su veya castalagin ile günlük oral sondadan sonra E0771 taşıyan SPF farelerinin kurban edilmesindeki tümör boyutu.  E, sıralı PD-1 veya IsoPD-1 enjeksiyonları ve su veya castalagin (n = 5 fare/grup) ile günlük oral sonda ile tedavi edilen GF koşulları altında yetiştirilen farelerde MCA-205 tümör kinetiği.  Ortalama SEM, B E'de temsil edilir. ns, anlamsız;  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Ortalama SEM, B E'de temsil edilir. ns, anlamsız;  *, P 0.05;  **, P 0.01;  ***, P 0.001.  Ortalama SEM, B E'de temsil edilir. ns, anlamsız;  *, P 0.05;  **, P 0.01;  ***, P 0.001.
          Figür 3.
          Castalagin'in, benzer antitümör aktiviteye sahip CC'nin biyoaktif bileşiği olarak tanımlanması. A, CC fraksiyonasyon prosedürünün şeması ve CC'den biyoaktif fraksiyonların izolasyonunu gösteren kromatogramların özeti (λ = 254 nm): Polar (P), orta polar (MP) ve polar olmayan (NP) fraksiyonları içeren CC ekstraktı (üst kromatogram) ). P1–4 alt fraksiyonlarını ve polar alt fraksiyon 3'ü (P3; alt kromatogram) içeren polar fraksiyonun (orta kromatogram) gösterimi. B, CC veya P fraksiyonu ile günlük oral sonda ile tedavi edilen MCA-205 taşıyan farelerin kurban edilmesindeki tümör boyutu ( n = 10 fare/grup). C,CC, standart konsantrasyonda castalagin (fare başına 0.85 mg/kg) veya su ( n = 10 fare/grup) ile günlük oral takviyeden sonra MCA-205 modelinde kurban edildiğinde tümör boyutu . D, Standart konsantrasyonda (fare başına 0,85 mg/kg; n = 10 fare/grup) ardışık aPD-1 veya IsoPD-1 enjeksiyonları ve su veya castalagin ile günlük oral sondadan sonra E0771 taşıyan SPF farelerinin kurban edilmesindeki tümör boyutu ). E, ardışık aPD-1 veya IsoPD-1 enjeksiyonları ve su veya castalagin ile günlük oral sonda ile tedavi edilen GF koşulları altında yetiştirilen farelerde MCA-205 tümör kinetiği (n = 5 fare /grup). Ortalama ± SEM, B – E'de temsil edilir . ns, önemsiz; *, P < 0.05; **,P < 0.01; ***, P < 0.001.

          Castalagin'in P3 alt fraksiyonunun aktivitesinden sorumlu olduğunu doğrulamak için farklı kaynaklardan saf castalagin elde ettik: (i) bir analitik standart üreticisi ve (ii) meşe ağacı özleri. Çeşitli castalagin kaynaklarının sıvı kromatografi-kütle spektrometrisi (LC-MS) ve 2-D nükleer manyetik rezonans spektroskopisi ile analizi, P3 alt fraksiyonunun ve meşeden izole edilen castalagin'in analitik standartla aynı olduğunu doğruladı (Ek Şekil S8A-S8F). P fraksiyonunda bulunan benzer konsantrasyonlarda (fare başına 0,85 mg/kg) meşeden analitik standart veya castalagin kullanarak, sırasıyla tek başına veya αPD-1 ile kombinasyon halinde kullanıldığında MCA-205 ve E0711 modellerinde benzer tümör inhibisyonu elde ettik (Şekil 3CVe​veD).D). Daha sonra, kastalajinin mikrobiyom bağımlı etkisini doğrulamak için bir ilke kanıtı deneyi gerçekleştirdik; bu sayede, GF farelerinde kastalajinin oral yoldan verilmesi, aPD-1 ile kombinasyon halinde bile hiçbir antitümör etkiye yol açmadı (Şekil 3E). Castalagin, Mikrobiyom Kompozisyonunda ve Metabolit Üretiminde Değişim Yoluyla Antitümör Aktivitesi Gösteriyor


          Daha sonra, MCA-205 modelinde 16S rRNA mikrobiyom profillemesi ile castalagin'in SPF farelerindeki mikrobiyom üzerindeki etkisini ele aldık. Castalagin, oral takviyeden sonra alfa çeşitliliğini arttırdı (Ek Şekil S9A). Takson seviyesinde castalagin, Ruminococcaceae UBA1819, A. muciniphila, Ruminococcus, Blautia ve Alistipes'in zenginleşmesine yol açarken , su grubundaki dışkılar Lachnospiraceae UCG-001 ve Lachnoclostridium (Şekil 4A). Tümör modelinden bağımsız olarak tüm SPF deneylerinden elde edilen 16S rRNA sonuçlarını birleştirerek, CC sonrası Ruminoccocus , Alistipes , Parasutterella ve Oscillospiraceae UCG 005 ve castalagin takviyesini gösterdik (Ek Şekil S9B).
          Şekil 4. Castalagin, mikrobiyom bileşimini ve metabolit üretimini etkiler.  A, MCA-205 modelinin (n = 10 fare/grup) su/IsoPD-1'e karşı castalagin/IsoPD-1 gruplarının 16S rRNA sıralama analizinden sonra diferansiyel bolluk analizi sonuçlarının Volcano arsa gösterimi.  Her grupta zenginleştirilmiş bakteriler, ayarlanmış P değeri (dolgu şekli sembolü) ve P değeri (dolgu şekli sembolü yok; yanlış keşif oranı: 0,05) kullanılarak temsil edilir.  B, sudaki MCA-205 deneyinden (IsoPD-1 ve PD-1) ve castalagin/CC (IsoPD-1 ve PD-1) gruplarından dışkı numunelerindeki tür zenginliğinin temsili ile metagenomik dizileme.  Beta çeşitliliği için Bray Curtis temsili.  C, Su (IsoPD-1 ve PD-1) ve castalagin/CC (IsoPD-1 ve PD-1) grupları arasındaki metagenomik sıralama analizinden sonra diferansiyel bolluk analizi sonuçlarının Bar grafiği gösterimi.  D,  Dışkı ve serumdaki metabolit nispi bolluğundaki değişimin ısı haritası.  Metabolit bolluğunun hiyerarşik kümelenmesi (Öklid mesafesi, Ward bağlantı yöntemi) gösterilmiştir (n = 7 fare/grup).  E, Metabolitler, serumda su ve castalagin arasındaki temel koordinat analizi.  F, Su veya castalagin alan farelerin tümöründen diferansiyel metabolit farkı için Volcano arsa gösterimi (n = 7 fare/grup).  Yatay noktalı siyah çizgi, P = 0.05'i gösterir ve yukarıdaki noktalar önemli ölçüde farklı bolluğa sahip metabolitleri gösterir (P = 0.05).  *, P 0.05.  Metabolitler, serumda su ve castalagin arasındaki ana koordinat analizini yapar.  F, Su veya castalagin alan farelerin tümöründen diferansiyel metabolit farkı için Volcano arsa gösterimi (n = 7 fare/grup).  Yatay noktalı siyah çizgi, P = 0.05'i gösterir ve yukarıdaki noktalar önemli ölçüde farklı bolluğa sahip metabolitleri gösterir (P = 0.05).  *, P 0.05.  Metabolitler, serumda su ve castalagin arasındaki ana koordinat analizini yapar.  F, Su veya castalagin alan farelerin tümöründen diferansiyel metabolit farkı için Volcano arsa gösterimi (n = 7 fare/grup).  Yatay noktalı siyah çizgi, P = 0.05'i gösterir ve yukarıdaki noktalar önemli ölçüde farklı bolluğa sahip metabolitleri gösterir (P = 0.05).  *, P 0.05.
          Şekil 4.
          Castalagin, mikrobiyom bileşimini ve metabolit üretimini etkiler. A, MCA-205 modelinin ( n = 10 fare/grup) su/IsoPD-1'e karşı castalagin/IsoPD-1 gruplarının 16S rRNA sıralama analizinden sonra diferansiyel bolluk analizi sonuçlarının Volcano arsa gösterimi. Her grupta zenginleştirilmiş bakteriler, ayarlanmış P değeri (dolgu şekli sembolü) ve P değeri (dolgu şekli sembolü yok; yanlış keşif oranı: 0,05) kullanılarak temsil edilir. B, sudaki MCA-205 deneyinden (IsoPD-1 ve αPD-1) ve castalagin/CC (IsoPD-1 ve αPD-1) gruplarından dışkı numunelerindeki tür zenginliğinin temsili ile metagenomik dizileme. Beta çeşitliliği için Bray – Curtis gösterimi. C,Su (IsoPD-1 ve αPD-1) ve castalagin/CC (IsoPD-1 ve αPD-1) grupları arasındaki metagenomik sıralama analizinden sonra diferansiyel bolluk analizi sonuçlarının çubuk grafik gösterimi. D, Dışkı ve serumdaki metabolit nispi bolluğundaki değişimin ısı haritası. Metabolit bolluğunun hiyerarşik kümelenmesi (Öklid mesafesi, Ward bağlantı yöntemi) gösterilmiştir ( n = 7 fare/grup). E, Metabolitlerin serumdaki su ve castalagin arasındaki ana koordinat analizi. F, Su veya castalagin alan farelerin tümöründen diferansiyel metabolit farkı için Volcano arsa gösterimi ( n = 7 fare/grup). Yatay noktalı siyah çizgi, P'nin nerede olduğunu gösterir.= 0.05, yukarıdaki noktalar önemli ölçüde farklı bolluğa sahip metabolitleri gösterir ( P < 0.05). *, P < 0.05.

          Mikrobiyom bileşimindeki bu değişiklikleri doğrulamak için, fare dışkısının metagenomik av tüfeği dizilimini gerçekleştirdik. Shannon ve Simpson endeksleri, CC ve castalagin ile tedavi sonrası önemli ölçüde daha yüksekti, oysa gözlemlenen türler sayısal olarak arttı ancak anlamlı değildi (Ek Şekil S9C). CC/castalagin takviyesi, su kontrolü ile karşılaştırıldığında benzersiz bakteri kümesi gösterdi ve CC sonrası Ruminococcaceae UBA1394 , Alistipes finegoldii , Alistipes onderdonki , Christensenellaceae QANA01 ve Bilophila wadsworthia'nın zenginleştirilmesi ve castalagin takviyesi ile ilişkilendirildi (Şekil 4BVe​ve C).C). Ruminococcaceae UBA 1394'ün zenginleştirilmesine ek olarak , castalagin/IsoPD-1 grubu, Ruminococcaceae UBA 3818, Ruthenibacterium lactatiformans ve A. muciniphila'nın da castalagin sonrası arttığını gösterdi (Ek Şekil S9D). Ruthenibacterium lactatiformans , SILVA rRNA veri tabanına göre 16S rRNA tarafından tanımlanan Ruminococcaceae UBA1819 sinyaline karşılık gelir .

          Castalagin sonrası mikrobiyom bileşiminde bir kayma olduğunu gösteren sonuçlarımıza dayanarak, castalagin'in metabolit üretimi üzerindeki etkisini araştırdık. Fareler, 14 günlük geniş spektrumlu ATB şartlandırması veya su ile tedavi edildi. MCA-205 tümör hücreleri daha sonra aşılandı ve her grup alt bölümlere ayrıldı ve castalagin veya PBS ile tedavi edildi. Serum, dışkı, tümör, karaciğer, ileum ve kolon içerikleri üzerinde kromatografik ve kütle spektrometrik yöntemlerin bir kombinasyonu ile metabolit ekstraksiyonu ve ölçümü yapıldı. CC takviyesi sonrası metabolit üretimi, dışkı ve serumdaki ATB grupları ile karşılaştırıldığında suda farklıydı, bu da kastalajinin mikrobiyoma bağımlı mekanizmasını destekliyordu (Şekil 4D). Daha sonra, ATB almayan fareleri değerlendirdik ve su kontrolüne kıyasla castalagin ile tedavi edilen farelerin serumunda önemli bir metabolomik kayma bulduk ((Şekil 4E). Daha spesifik olarak, kastalagin, tümör ve serumda taurin-konjuge safra asitlerinin bir yukarı regülasyonu ile ilişkilendirilmiştir.Şekil 4F; Ek Şekil S10A). Tersine, ikincil taurinlenmiş safra asitleri, castalagin sonrası dışkıda azaldı (Ek Şekil S10B ve S10C). Bu sonuçlar, castalaginin tek başına bağırsak mikrobiyom kompozisyonunu değiştirebildiğini, farklı bir metabolik fenotipe dönüştüğünü ve CC'nin mikrobiyoma bağımlı aktif bileşenini temsil ettiğine dair daha fazla kanıt sağladığını ortaya koydu. CC'ye Benzer, Castalagin'in Sistemik Bağışıklık Etkileri CD8 + T-hücresine Bağımlıdır


          Daha sonra, castalagin'in CC'nin sistemik bağışıklık tepkisini beş yaklaşım kullanarak yeniden üretip üretemeyeceğini inceledik. İlk olarak, MCA-205 deneylerindeki akış sitometri analizi, polifenolün, SPF farelerinden TIL'lerde TCM CD8 + T hücrelerini yukarı regüle ettiğini doğrularken, GF farelerinde frekansta bir fark gözlenmedi ((Şekil 5A). E0771 modelinde, castalagin ayrıca su/αPD-1 ile karşılaştırıldığında hem TIL'lerde hem de splenositlerde aPD-1 ile kombinasyon halinde bellek CD8 + T hücrelerinin (CD44 hi CD62L - CD8 + T hücreleri) sıklığında bir artışla ilişkilendirildi. (Ek Şekil S11A). İkincisi, tümörlerin immünofloresan boyaması, su/IsoPD-1 ile karşılaştırıldığında castalagin/IsoPD-1 grubunda CD8 + /CD4 + FOXP3 + T-hücre oranında bir artış gösterdi (Şekil 5BVe​ve C).C). Üçüncüsü, castalagin'in TIL'leri modüle ettiğine dair gösterimizi desteklemek için, MCA-205 modellerinde diferansiyel olarak eksprese edilen yolları tanımlamak için RNA dizilimi (RNA-seq) yoluyla tümör transkriptom profili yapıldı. Su/IsoPD-1 kontrolü ile karşılaştırıldığında castalagin/IsoPD-1 grubunda antijen işleme ve sunum, T-hücresi reseptörü sinyal yolu ve ayrıca daha iltihaplı bir tümör mikro ortamıyla ilişkili NF-κB sinyali dahil olmak üzere gen yollarında bir artış gözlemledik. (Şekil 5D). Bu yollar içinde, transkriptom analizi, castalagin grubunda CD3 ε, CD8 α, IFN y ve MAPK11'in aşırı ekspresyonunu gösterdi (Ek Şekil S11B). Dördüncüsü, RNA-seq'den bağışıklık hücrelerini tahmin etmek için CIBERSORT programını kullanarak, castalagin , su gruplarına kıyasla sayısal olarak daha yüksek bir CD8 + T hücresi sıklığı ile ilişkilendirildi (Ek Şekil S11C). Son olarak, daha önce açıklandığı gibi farelere intravenöz karboksifloresin süksinimidil ester (CSFE) etiketli hedef hücreler enjeksiyonu yapıldıktan sonra bir in vivo CD8 + T-hücresi öldürme testi gerçekleştirildi ( 23). Bu OT-1 hücrelerinin enjeksiyonundan sonra, fareler CpG/OVA ile aşılanmıştır. CSFE lo atımlı OVA OT-I splenositleri ve CFSE hi atımsız OVA OT-I splenositleri daha sonra farelere aktarıldı. Kastalajinin CD8 + T hücre- bağımlı mekanizmasına işaret ederek, daha yüksek öldürme yüzdesine karşılık gelen su grubuna kıyasla, kastalagin grubundaki farelerin boşaltan lenf düğümlerinde CFSE lo CD8 + T hücrelerinin daha düşük bir oranını gözlemledik ((Şekil 5E).
          Şekil 5. Castalagin'in bağışıklığı güçlendirici etkisi.  A, castalagin ile suyu karşılaştıran GF ve SPF deneylerinde MCA-205 TIL ve CD8+ TCM hücresi (CD45RB CD62L+) alt popülasyonunun akış sitometri analizi (n = 10 fare/grup).  B, Castalagin/IsoPD-1 ve su/IsoPD-1 gruplarında CD8+, CD4+ ve FOXP3+ hücreleri için MCA-205 tümörlerinin temsili immünofloresan görüntüleri.  C, B'de gösterilen her iki grup için CD8+/FOXP3+CD4+ hücre oranı sonuçları için tümör immünofloresan. Her daire bir tümörü temsil eder.  D, MCA-205 tümörlerinin castalagin/IsoPD-1 ile su/IsoPD-1 gruplarını karşılaştıran KEGG veri tabanına dayalı gen seti zenginleştirme analizi kullanılarak RNA-seq sonuçlarından Yol sınıflandırması.  E, Castalagin veya su ile tedavi edilen ve CpG/OVA ile immünize edilen farelerde (n = 10 fare/grup) drenaj lenf düğümünden (dLN) CD8+ T OT-1 hücrelerinin öldürülme yüzdesi.  *, P 0.  05;  **, P 0.01.
          Şekil 5.
          Castalagin'in bağışıklık güçlendirici etkisi. A, castalagin ile suyu karşılaştıran GF ve SPF deneylerinde MCA-205 TIL ve CD8 + TCM hücresi (CD45RB - CD62L + ) alt popülasyonunun akış sitometrisi analizi ( n = 10 fare/grup). B, castalagin/IsoPD-1 ve su/IsoPD-1 gruplarında CD8 + , CD4 + ve FOXP3 + hücreleri için MCA-205 tümörlerinin temsili immünofloresan görüntüleri . C, B'de gösterilen her iki grup için CD8 + /FOXP3 + CD4 + hücre oranı sonuçları için tümör immünofloresan. Her daire bir tümörü temsil eder. D, MCA-205 tümörlerinin castalagin/IsoPD-1 ile su/IsoPD-1 gruplarını karşılaştıran KEGG veri tabanına dayalı gen seti zenginleştirme analizi kullanılarak RNA-seq sonuçlarından Yol sınıflandırması. E, Castalagin veya su ile tedavi edilen ve CpG/OVA ile immünize edilen farelerde drenaj lenf düğümünden (dLN) CD8 + T OT-1 hücrelerinin öldürülme yüzdesi ( n = 10 fare/grup). *, P < 0.05; **, P < 0.01.

          CC ve castalagin'in bağırsak mikrobiyom bileşiminde benzer kaymaları indüklediği, TIL'lerde bir modifikasyona dönüştüğü ve castalagin'in bir antitümör yanıtı indükleyen P3 fraksiyonu açısından zenginleştirilmiş tek polifenol olduğu göz önüne alındığında, castalaginin antitümörden sorumlu bileşik olduğu sonucuna vardık. CC'nin etkinliği. Castalagin, αPD-1 Direncini Aşabilir ve Ruminococcaceae Bolluğuyla İlişkili Doza Bağlı Bir Anti Tümör Etkisine Sahiptir


          Daha önce avatar farelerimizle gerçekleştirdiğimiz gibi, ATB ile tedavi edilmiş ve GF farelerinde NSCLC'li dört NR hastasının dışkısını kullanarak FMT'yi takiben castalaginin terapötik etkilerini test ettik. Tek başına castalagin ilavesi, antitümör aktivite gösterebildi ancak aynı zamanda aPD-1 aktivitesini de arttırdı (Şekil 6AVe​ve B).B). 16S rRNA kullanılarak bu FMT deneylerinden alınan dışkı örneklerinin profili ayrıca, castalagin tedavisinin su kontrol grubuyla karşılaştırıldığında Ruminococcus , Alistipes , Christensenellaceae R-7 grubu ve Paraprevotella'nın nispi bolluğunu arttırdığını doğruladı (Şekil 6C; Ek Şekil S12A). Tersine, Lachnosclostridium, castalagin tedavisinden sonra yetersiz temsil edildi.
          Şekil 6. Castalagin, NSCLC'li NR hastalarından FMT tarafından sağlanan farelerde PD-1 direncini atlatır ve mikrobiyom bileşimini doza bağlı bir şekilde etkiler.  A, NSCLC'li üç NR hastasından (NR 1, 3 ve 6) alınan dışkı örneğinin FMT'si, GF C57BL/6 farelerinde (n = 12/grup) gerçekleştirildi.  İki hafta sonra, MCA-205 sarkoma hücreleri aşılandı ve farelere, kastalagin veya su ile günlük bir ağızdan sonda verildi.  B, PD-1 veya IsoPD-1 ile kombinasyon halinde kastalagin veya suyla günlük oral takviye alan üç NR hastasından (NR 3, 5 ve 6) FMT sonrası ATB-avatar modelinde MCA-205 tümör büyüme kinetiği.  C, NR FMT deneylerinde castalagin ve su grupları arasında Ruminococcus, Alistipes ve Christensenellaceae R-7 grubunun 16S rRNA sıralama analizinden sonra bağıl bolluk analizi sonuçları.  D,  MCA-205 tümör boyutu, 0 mg/kg'dan 2.55 mg/kg'a artan konsantrasyonlarda günlük oral castalagin sondası uygulanan farelerin kurban edilmesinde.  E, MCA-205 deneyinde Ruminococcaceae saptaması için spesifik primerler kullanılarak 0,21, 0,85 ve 2,55 mg/kg su veya castalagin ile 6 günlük oral sondadan sonra fare dışkısından ekstrakte edilen DNA'nın Gerçek Zamanlı PCR'si (n = 5/ grup).  SEM'in temsil edildiği anlamına gelir.  ns, önemsiz;  *, P 0.05;  **, P 0.01;  ***, P 0.001.  05;  **, P 0.01;  ***, P 0.001.  05;  **, P 0.01;  ***, P 0.001.
          Şekil 6.
          Castalagin, NSCLC'li NR hastalarından FMT tarafından sağlanan farelerde aPD-1 direncini atlatır ve mikrobiyom bileşimini doza bağlı bir şekilde etkiler. A, NSCLC'li (NR 1, 3 ve 6) üç NR hastasından alınan dışkı örneğinin FMT'si, GF C57BL/6 farelerinde ( n = 12/grup) yapıldı . İki hafta sonra, MCA-205 sarkoma hücreleri aşılandı ve farelere, kastalagin veya su ile günlük bir ağızdan sonda verildi. B, aPD-1 veya IsoPD-1 ile kombinasyon halinde castalagin veya su ile günlük oral takviye ile üç NR hastasından (NR 3, 5 ve 6) FMT sonrası ATB-avatar modelinde MCA-205 tümör büyüme kinetiği. C, Ruminococcus'un 16S rRNA sıralama analizinden sonra bağıl bolluk analizi sonuçları ,NR FMT deneylerinde castalagin ve su grupları arasında Alistipes ve Christensenellaceae R-7 grubu. D, MCA-205 tümör boyutu, 0 mg/kg'dan 2.55 mg/kg'a artan konsantrasyonlarda günlük oral castalagin sondası uygulanan farelerin kurban edilmesinde. E, MCA-205 deneyinde Ruminococcaceae saptaması için spesifik primerler kullanılarak 0,21, 0,85 ve 2,55 mg/kg su veya castalagin ile 6 günlük oral sondadan sonra fare dışkısından ekstrakte edilen DNA'nın Real-time PCR'si ( n = 5 / grup). Ortalama ± SEM temsil edilir. ns, önemsiz; *, P < 0.05; **, P < 0.01; ***, P < 0.001.

          Castalagin aktivitesinin doza bağlı olup olmadığını belirlemek için, 0 ila 2.55 mg/kg arasında farklı castalagin konsantrasyonları kullanarak farelerde oral sonda uyguladık. Antitümör aktivite, yalnızca 0.85 mg/kg'da önemli hale geldi ve daha yüksek konsantrasyonlarda platoya ulaştı (Şekil 6D; Ek Şekil S12B). Ayrıca, Ruminococcaceae bolluğunun castalagin aktivitesi ile korele olup olmadığını belirlemek için, doza bağlı deneylerden elde edilen dışkı üzerinde Ruminococcaceae'ye özgü primerler ile qRT-PCR gerçekleştirdik . Ruminococcaceae , kontrol grubu (0 mg/kg;Şekil 6E). Bununla birlikte, 0,85 mg/kg (antitümör etkisi ile) castalagin takviyesinin ardından Ruminococcaceae bolluğu önemli ölçüde arttı ve Ruminococcaceae bolluğunda bu konsantrasyonun ötesinde başka bir artış gözlenmedi. Castalagin Tercihen Ruminococcus'un Hücresel Zarfına Bağlanır


          Bağırsakta, castalagin, ayrıca bağırsak bakteri türleri tarafından ürolitine dönüştürülen kastalin ve ellagik aside hidrolize edilir (ref. 24 ; Ek Şekil S13). Daha sonra, castalagin veya diastereomeri vescalagin'in (Ek Şekil S14A – S14G) metabolitlerinin antitümör aktivitesine dahil olup olmadığını ve dışkı örneklerinde saptanabilir olup olmadığını açıklamaya çalıştık. Kastalajinin aksine, veskalagin veya aşağı akış metabolitleri olan kastalin, ellagik asit ve ürolitin A ile MCA-205 modelimizde hiçbir antitümör etkisi gözlenmedi (Şekil 7A). Bu sonuç, bağırsak bakterileri tarafından metabolizmanın atlanmasının bir antitümör etkisine yol açmadığını ve mikrobiyota kompozisyonunun değişmesi için bağırsak bakterileri tarafından castalagin metabolizmasının gerekli olabileceğini düşündürmektedir.
          Şekil 7. Castalagin ve metabolitleri antitümör aktivite sağlar ve doğrudan Ruminococcus'un hücresel zarfı ile etkileşime girer.  A, Castalagin veya bunun akış aşağı metabolitleri veya diastereomeri veskalagin alan farelerin kurban edilmesinde tümör boyutu.  Bu bileşiklerin yapıları, Ek Şekil S13'te gösterilmektedir.  B, NSCLC ICI-yanıt veren (R; N = 11) ve ICI-yanıt vermeyen (NR; N = 12) hastalardan alınan dışkı örnekleri kullanılarak yapılan ex vivo castalagin metabolizması tahlillerine dayalı olarak, castalagin metabolizörlerinin ve metabolize etmeyenlerin nispi oranı.  Ex vivo castalagin metabolizması ile hasta yanıt durumu arasındaki ilişkiler, her kategorideki hasta sayısına ilişkin Fisher kesin testi kullanılarak belirlendi (P = 0.0272).  Hastalar için metabolik fenotiplerin (metabotipler) ayrıntılı atamaları Ek Şekil S15B'de rapor edilmiştir.  C,  ICI'ye uygun ve castalagin metabolize etmeyen ve metabolize ediciler arasında ayrılmış NSCLC'li 23 hastadan alınan metagenomik mikrobiyom sekansının ısı haritası gösterimi.  ORR, nesnel yanıt oranı.  D, R. bromii, R. bicirculans, E. coli ve B. thetaiotaomicron üzerinde etiketleme deneyleri.  Hücreler, 2 mol/L fluo-castalagin (FC) veya 2 mol/L serbest floresein ve serbest castalagin (F + C) ile 1 saat 37°C'de inkübe edildi. Her daire bir bağımsız deneyi temsil eder.  E, R. bromii, E. coli ve B. thetaiotaomicron etiketli fluo-castalagin'in temsili epifloresan mikroskopi görüntüleri.  Birleştirme, floresan ve faz kontrastının üst üste bindirilmiş görüntülerini temsil eder.  Ölçek çubuğu, 2 m.  F, R. bromii veya PBS ile oral sonda ile kombinasyon halinde kastalagin veya su ile tedavi edilen MCA-205 taşıyan GF farelerinin kurban edilmesinde tümör boyutu.  Her daire bir hayvanı temsil eder.  G, MCA-205 tümörleri taşıyan GF farelerinde R. bromii tespiti için spesifik primerler kullanılarak fare dışkısından ekstrakte edilen DNA'nın gerçek zamanlı qPCR'si.  Temsil edilen ortalama SEM.  *, P 0.05;  **, P 0.01;  ***, P 0.001.
          Şekil 7.
          Castalagin ve metabolitleri antitümör aktivite sağlar ve doğrudan Ruminococcus'un hücresel zarfı ile etkileşime girer . A, Castalagin veya bunun akış aşağı metabolitleri veya diastereomeri veskalagin alan farelerin kurban edilmesinde tümör boyutu. Bu bileşiklerin yapıları, Ek Şekil S13'te gösterilmektedir. B, NSCLC ICI-yanıt veren (R; N = 11) ve ICI-yanıt vermeyen (NR; N = 12) hastalardan alınan dışkı örnekleri kullanılarak yapılan ex vivo castalagin metabolizması tahlillerine dayalı olarak, castalagin metabolizörlerinin ve metabolize etmeyenlerin nispi oranı . ex vivo arasındaki ilişkilercastalagin metabolizması ve hasta yanıt durumu, her kategorideki hasta sayısına ilişkin Fisher kesin testi kullanılarak belirlendi ( P = 0.0272). Hastalar için metabolik fenotiplerin (metabotipler) ayrıntılı atamaları Ek Şekil S15B'de rapor edilmiştir. C, ICI'ye uygun ve castalagin metabolize etmeyen ve metabolize ediciler arasında ayrılmış NSCLC'li 23 hastadan alınan metagenomik mikrobiyom sekansının ısı haritası gösterimi. ORR, nesnel yanıt oranı. D, R. bromii , R. bicirculans , E. coli ve B. thetaiotaomicron üzerinde etiketleme deneyleri. Hücreler, 2 umol/L fluo-castalagin (FC) veya 2 umol/L serbest floresin ve serbest castalagin (F + C) ile 37°C'de 1 saat inkübe edildi. Her daire bir bağımsız deneyi temsil eder. E, fluo-castalagin etiketli R. bromii, E. coli ve B. thetaiotaomicron'un temsili epifloresan mikroskopi görüntüleri . Birleştirme, floresan ve faz kontrastının üst üste bindirilmiş görüntülerini temsil eder. Ölçek çubuğu, 2 mikron. F, R. bromii veya PBS ile oral sonda ile kombinasyon halinde kastalagin veya su ile tedavi edilen MCA-205 taşıyan GF farelerinin kurban edilmesinde tümör boyutu . Her daire bir hayvanı temsil eder. G, R. bromii için spesifik primerler kullanılarak fare dışkısından ekstrakte edilen DNA'nın gerçek zamanlı qPCR'siMCA-205 tümörleri taşıyan GF farelerinde saptama. Ortalama ± SEM temsil edildi. *, P < 0.05; **, P < 0.01; ***, P < 0.001.

          20x = 17 mg/kg'a kadar günlük castalagin ile tedavi edilen farelerin dışkısı ve serumu üzerinde HPLC analizi kullanarak castalagin tespit edemedik. Bu nedenle, castalaginin kanserli bireysel hastalar tarafından farklı şekilde metabolize edilip edilmediğini değerlendirmek için, ICI ile tedavi edilen NSCLC'li 23 hastadan dışkı örnekleri topladık (12 NR ve 11 R; Ek Tablo S3) ve ex vivo castalagin metabolizma deneyleri yaptık . NR hastalarının %41'ine kıyasla R hastalarının %91'inin dışkısında bulunan bakteriler, castalagin'i urolithin A, isourolithin A ve urolithin B gibi son ürün metabolitlerine metabolize edebildi ( P < 0.05 ;Şekil 7B; Ek Şekil S15A ve S15B). Daha sonra metabolize ediciler ve metabolize etmeyenler arasındaki metagenomik mikrobiyom profilini analiz ettik ve metabolize edicilerin daha yüksek bir alfa çeşitliliği ve farklı kümeler (Ek Şekil S15C ve S15D) gösterdiğini ve ayrıca Ruminococcus bicirculans , Ruminococcus bromii, Alistipes finegoldii, Alistipes onderdonki ve Eubacterium bolluğunu artırdığını bulduk . (Şekil 7C).

          Hem murin hem de insan deneylerinde Ruminococcus , castalagin takviyesi sonrası sürekli olarak zenginleştirilmiş bakterilerden biriydi. Bu nedenle, ICI'ye yatkın kanserli hastalar için yararlı olduğu bilinen kastalagin ve Ruminococcus arasındaki etkileşimi göstermeye çalıştık ( 25 ). Ruminococcus güç üreyen bakteriler olmasına rağmen , R. bromii ve R. bicirculans başarılı bir şekilde kültive edilmiş ve metabolize edici hastalarda zenginleştirilmiştir. R. bromii ve R. bicirculans'ın büyüme eğrilerini karşılaştırdıkcastalagin ile farklı kontrol bakterilerine karşı ve büyüme üzerinde herhangi bir yararlı etki gözlemlemedi (Ek Şekil S16).

          Castalagin ve Ruminococcus arasındaki potansiyel bir etkileşimi test etmek için , castalagin'i, R. bromii ve R. bicirculans'ın yanı sıra kontrol bakterileri Bacteroides thetaiotaomicron ve Escherichia'nın varlığında inkübe edilen floresein (fluo-castalagin; Ek Şekil S17A) ile etiketledik. anaerobik koşullarda coli . Akış sitometrisi analizi, serbest flüoresin ile hücre etiketlemesi göstermezken sırasıyla R. bromii , R. bicirculans ve B. thetaiotaomicron hücreleri ile işaretlenmiş fluo-castalagin %79, %47 ve %32'dir (Şekil 7DVe​ve E;E; Ek Şekil S17B). Buna karşılık, E. coli hücrelerinin yalnızca %7'si etiketlendi. Ayrıca, fazla miktarda (100x) etiketlenmemiş castalagin eklenmesi , R. bromii etiketleme etkinliğini önemli ölçüde azalttı ve serbest castalagin'in fluo-castalagin probu ile rekabetçi bir etkisinin kanıtı sağladı (Ek Şekil S17C). İşaretli bakterileri incelemek için floresan mikroskobu kullandık ve fluo-castalajinin R. bromii hücreleri tarafından içselleştirilmediğini ancak hücre zarfı ile ilişkili kaldığını gözlemledik (Şekil 7E). Daha da önemlisi, akış sitometri sonuçlarımıza benzer şekilde, R. bromii ile karşılaştırıldığında floresans B. thetaiotaomicron için daha zayıftı ve E. coli hücreleri için zorlukla tespit edilebilirdi. R. bromii ve castalagin arasındaki bir etkileşimi daha fazla göstermek için MCA-205'i GF farelerine aşıladık. Ne R. bromii ne de castalagin'in oral takviyesinin bir etkisi olmadı, oysa her ikisinin kombinasyonu antitümör aktivite gösterdi (Şekil 7F). Castalagin ve R. bromii'nin bu ek antitümör etkisi daha sonra SPF farelerinde doğrulandı (Ek Şekil S18A). Önemli olarak, qRT-PCR, kombinasyonun hem GF hem de SPF fare dışkısında Ruminococcaceae ve R. bromii nispi bolluğunda önemli bir artışa çevrildiğini gösterdi ((Şekil 7G; Ek Şekil S18B – S18D).

          Son olarak, bir prensip kanıtı deneyinde, CC'nin oral uygulamasının güvenliğini ele alan bir klinik araştırmaya ( NCT04058392 ) kayıtlı kanser olmayan iki hastanın dışkısını analiz ettik ( 26 ). Ön dışkı metagenomikleri , CC ile tedavi edilmiş farelerde elde edilen sonuçlarla tutarlı olarak, çeşitlilikte ve R. bromii'nin zenginleştirilmesine yönelik pozitif bir eğilim ortaya koydu (Ek Şekil S18E).

          Git: Tartışma


          Bağırsak mikrobiyomu, tümör immün gözetimini şekillendirmede ve ICI etkinliğini güçlendirmede kilit bir oyuncu olarak ortaya çıkmıştır. Bağırsak mikrobiyomunu kullanmak, bu nedenle, kanserde adjuvan tedavi için yeni ve umut verici bir strateji olarak kabul edilir. CC'nin daha önce, esas olarak A. muciniphila'nın zenginleştirilmesi yoluyla, obeziteye bağlı metabolik sendroma karşı güçlü mikrobiyom bağımlı aktivite sergilediği gösterilmişti ( 19 ).

          Bu çalışmada, CC'de bol miktarda bulunan bir ellagitannin olan polifenol castalagin'in, bu prebiyotik ekstraktın antitümör aktivitesini taşıyan başlıca biyoaktif molekül olduğunu keşfettik. İki tümör modelinde, CC'ye benzer şekilde, castalagin'in antitümör etkisinin, aPD-1 uygulamasından bağımsız olarak mikrobiyom bileşiminde faydalı bir kaymaya neden olduğunu gösterdik. Metagenomik sekanslama, castalagin tedavisinin, CD8 + , PD-L1 + CD8 + 'nın işe alınmasıyla ilişkili olan Ruminoccoccaceae, Alistipes ve Ruthenibacterium lactatiformans'ın bolluğu üzerinde CC'nin sahip olduğu etkiyi yeniden ürettiğini doğruladı ( Ruminococcaceae UBA1819'un 16S rRNA sinyaline karşılık gelir ) ve CD8Tümör mikro ortamı içindeki + /FOXP3 + CD4 + T hücreleri. Ek olarak, castalagin tarafından indüklenen bu bağırsak mikrobiyal/bağışıklık değişikliklerine taurin konjuge safra asitlerinde bir artışın eşlik ettiğini gösterdik. Ayrıca, gelecekteki terapötik denemeler için hazır ve erişilebilir bir castalagin kaynağı sağlayan, meşe ağacı kullanarak etkili bir özütleme ve saflaştırma protokolü geliştirdik.

          Ayrıca, diğer yakından ilişkili metabolitler ve bunun diastereomeri veskalagin in vivo olarak antitümör aktivite göstermediğinden, kastalajinin etkisinin spesifik olduğunu da gösterdik . Castalagin metabolizması, tüketen bakterilere muhtemelen genişlemelerine yol açan, bileşimde küresel bir kaymaya neden olan ve ardından metabolitlerin üretimini değiştiren ve bir antitümör etkisi uygulayan, αPD-1 aktivitesini artıran ve direnci atlatan bir rekabet avantajı sağlar. Ayrıca, sekonder taurinlenmiş safra asitlerinin kolon adenomasını inhibe ettiği bilinmektedir ( 27 ) ve ATB tedavisinden sonra azalmaktadır, bu da ICI direnci ile ilişkilendirilmiştir ( 28) .). Ayrıca, flüoresan castalagin kullanarak, castalagin ve belirli bakterilerin hücre duvarı arasında, tercihen R. bicirculans ile karşılaştırıldığında R. bromii ile enerjiye bağımlı olmayan ancak spesifik bir etkileşim gösterdik . Bu, doğrudan metabolizmanın yokluğunda bile, castalagin'in kendisinin bağırsakta R. bromii ve muhtemelen diğer faydalı bakterilerin büyümesini destekleyebileceğini düşündürür. Castalagin-bakteriyel etkileşimi, in vitro olarak besin yönünden zengin ortamlarda rekabet avantajı sağlamasa da , bağırsak gibi karmaşık ve besin açısından kısıtlı bir ortamda bir miktar avantaj sağlayabilir. Ellagitanninler, reaktif radikalleri temizleme yetenekleriyle bilinirler ( 29) ve bir metabolik hastalık fare modelinde üzüm polifenollerinin uygulanmasının bağırsak reaktif oksijen türlerini azalttığı gösterilmiştir (ROS; ref. 30 ). Böylece, castalagin ile birleşen bakteriler, bağırsak epitelinin oksik-anoksik arayüzünde bulunan ROS'tan korunabilir ( 31, 32 ). Polifenoller ayrıca, demirden yoksun bir ortamda bir avantaj sağlayabilen katekol kısımları yoluyla ferrik demiri şelatlayabilir ( 33 ). Daha da önemlisi, Ruminococcus ile zenginleştirilmiş NSCLC yanıtlayıcılarının castalagin'i metabolize edebildiğine dair bulgumuz ve CC tedavisi sonrası Ruminococcus'ta bir artış gözlemlememiz , ayrıca castalaginin spesifik ve faydalı bakterilerle etkileşime girme eğilimi olduğunu düşündürür.

          Bu çalışma, ICI'ye yanıtı modüle etmede spesifik immünojenik bağırsak bakterilerinin önemini doğrulamaktadır. İlerlemiş melanomlu hastalarda, daha yüksek temel çeşitlilik ve R. bromii dahil olmak üzere Ruminococcaceae için aşırı temsil , tümörde ve periferik kanda CD8 + T hücrelerinin artan bir oranı ile ilişkilendirildi ve yararlı bir yanıtla ilişkilendirildi ( 12 ). Ek olarak Ruminococcus bakterisi cv2, kolon ve tümörlerde artan IFNy + CD8 + T hücreleri ile bağlantılı olan VE800 probiyotik kapsülde bulunan 11 faydalı bakteriden biridir ve şu anda bir klinik deneyde araştırılmaktadır ( NCT04208958 ; ref.14 ). ICI sonuçlarını modüle eden spesifik bakteriler , ilerlemiş KHDAK'li ve ICI'ye yatkın renal hücreli kanseri olan 153 hastada yanıtı öngören A. muciniphila ile ayrıca gösterilmiştir ( 10 ). Bu gözlem yakın zamanda NSCLC'li 338 hastanın prospektif bir çalışmasında doğrulandı ( 25 ). Bu çalışmada, dışkılarında saptanabilir A. muciniphila bulunan hastalarda en fazla bulunan bakteri R. bromii idi. Ayrıca, FMT ile ICI'yi birleştiren ilk klinik çalışmalarda, Ruminococcaceae spp. ve A. muciniphila'nın her ikisi de ICI'ye dirençli melanomlu R hastalarında FMT sonrası zenginleştirilmiştir ( 18, 34 ).

          Toplamda bu, prebiyotik olarak tek bir polifenolün mikrobiyom bağımlı antitümör etkisini gösteren ilk çalışmadır ve kanserli hastalarda bir ICI adjuvanı olarak castalagin ile stratejilerin kullanıldığı gelecekteki klinik deneylerin yolunu açar.

          Git: Yöntemler

          Fare Çalışmaları


          Tüm hayvan çalışmaları, Kurumsal Hayvan Bakım Komitesi (CIPA) tarafından onaylandı ve Kanada Hayvan Bakımı Konseyi yönergelerine (Etik numaraları: C18029BR'ler ve C18025BR'ler) uygun olarak gerçekleştirildi. Fare deneyleri, Charles River'dan elde edilen yedi haftalık dişi C57BL/6 fareleri kullanılarak yapıldı. GF dişi C57BL/6 fareleri, International Microbiome Center Germ-Free Tesisinden (Calgary Üniversitesi, Kanada) satın alındı ​​ve Centre de recherche du Centre Hospitalier de l'Université de Montréal (CRCHUM) GF Tesisinde tutuldu. Hücre Kültürü, Reaktifler ve Tümör Hücre Hatları


          Bu çalışma için MCA-205 fibrosarkom hücreleri ve E0771 meme adenokarsinomu, C57BL/6 fareleri için sınıf I MHC H-2 b singeneik hücre hatları kullanıldı. MCA-205 ve E0771 hücreleri, daha önce tarif edildiği gibi kültürlendi ( 10, 20 ). Tüm kültürler, PlasmoTest Mycoplasma Detection Kit (InvivoGen) kullanılarak Mycoplasma açısından kontrol edildi . MCA-205 Sarkom ve E0771 Meme Kanserinin Deri Altı Modeli


          Syngeneic C57BL/6 farelerine deri altından 0.8 x 10⁶ MCA-205 hücresi veya 0.5 x 10⁶ E0771 hücresi implante edildi . Tümörler 20 ila 35 mm2 boyuta ulaştığında , fareler dört kez (veya akış sitometri analizi için iki kez; aşağıdaki bölüme bakın) intraperitoneal olarak her üç günde bir aPD-1 mAb (250 ug/fare; klon RMP1-14, Bio) ile tedavi edildi X Cell) veya izotip kontrolü (klon 2A3, Bio X Cell). Tedavi başlangıcında, farelere aşağıdaki ürünlerle günlük bir oral sonda verildi: Myrciaria dubia, CC ham özü (Sunfood; fare başına 200 mg/kg); ekstraksiyon turu 1'den fraksiyonlar (P, MP, NP ve INS; fare başına 40.18 mg/kg); ekstraksiyon turu 2'den alınan fraksiyonlar (P1, P2, P3 ve P4; fare başına 40.18 mg/kg'lık P fraksiyonuna eşdeğer); vescalagin (CC'den ekstrakte edildi; aşağıdaki izolasyon işlemine bakın; fare başına 0.85 mg/kg); ellagik asit (fare başına 0.85 mg/kg; Sigma-Aldrich); ürolitin A (fare başına 0.85 mg/kg; Sigma-Aldrich); castalin (fare başına 0.5 mg/kg; PhytoProof, Sigma-Aldrich); ve castalagin (PhytoProof, Sigma-Aldrich veya gıda sınıfı meşeden izole edilmiş; aşağıdaki izolasyon işlemine bakınız). Kontrol grubunda, farelere günlük olarak su (100 uL) ile oral sonda verildi. Tümör bölgesi her üç günde bir kumpas ile rutin olarak izlendi. CD8 + ' datükenme deneylerinde, anti-CD8 mAb (150 μg/fare; klon 53-6.7, Bio X Cell) veya izotip kontrolü (klon 2A3, Bio X Cell) kullandık. Antibiyotik Tedavileri


          ATB ile yapılan deneyler için fareler, steril içme suyuna eklenen ampisilin (1 mg/mL), streptomisin (5 mg/mL) ve kolistin (1 mg/mL; Sigma-Aldrich) içeren bir ATB solüsyonu ile tedavi edildi. fareler ( 10 ). ATB aktivitesi daha önce tarif edildiği gibi doğrulandı ( 10 ). SPF ile yetiştirilen farelerdeki FMT deneyleri için, fareler FMT'den önce üç gün aynı ATB kombinasyonunu aldı. Metabolomik deneyler için fareler, ATB grubu için bir hafta aynı ATB kombinasyonunu aldı, ardından tümör hücreleri deri altından enjekte edildi. ATB grupları için fareler, deney boyunca kurban edilene kadar tümör hücresi implantasyonundan sonra ATB almaya devam etti. Tümörler 20 ila 35 mm2'ye ulaştığındaboyut olarak fareler, yukarıda tarif edildiği gibi altı gün boyunca günlük oral sondayla castalagin veya su ile tedavi edildi. Dışkı ve kan (serum için) oral sondanın başlamasından üç gün sonra toplandı ve karaciğer, tümör, ileum ve kolon içerikleri kurban sırasında toplandı ve Ek Malzemeler ve Yöntemlerde açıklanan metabolomik analiz için anında donduruldu. FMT Deneyleri


          Montreal'deki CRCHUM'da uygun etik onayı alındı ​​(Ethics 17.035). Daha önce yayınlandığı gibi ( 10 ), FMT, yanıt durumlarını belirlemek için hasta kayıtları retrospektif olarak analiz edildikten sonra, ICI'ye yatkın NSCLC'li on farklı hastadan alınan dışkı maddesinin çözülmesiyle gerçekleştirildi (Ek Tablo S1). FMT'den iki hafta sonra, tümör hücreleri deri altından enjekte edildi ve fareler, yukarıda tarif edildiği gibi CC, castalagin veya su içeren veya içermeyen aPD-1 veya izotip kontrolü ile tedavi edildi. Bağışıklık Hücrelerinin Akış Sitometrisi Analizi


          Tümörler ve dalaklar, MCA-205 tümörleri taşıyan farelerde ilk aPD-1 enjeksiyonundan 9 gün sonra ve E0771 tümörleri taşıyan farelerde ilk aPD-1 enjeksiyonundan 11 gün sonra toplandı. TIL'ler ve splenosit süspansiyonları daha önce yayınlandığı gibi hazırlandı ( 10 ). İki milyon tümör hücresi veya splenosit, Ek Tablo S4'te listelenen anti-fare antikorları ile membran boyamadan önce 4°C'de 30 dakika boyunca saflaştırılmış anti-fare CD16/CD32 (klon 93; eBioscience) ile önceden inkübe edildi. Hücre içi boyama için FOXP3 boyama kiti (eBioscience) kullanıldı. Canlı/Ölü Düzeltilebilir Aqua Ölü Hücre Leke Kiti (Life Technologies) kullanılarak ölü hücreler dışlandı. Numuneler, bir BD Fortessa 16 renkli sitometrede (BD) alındı ​​ve FlowJo yazılımı (BD) ile analizler yapıldı. İmmünofloresan Boyama


          Optimum kesme sıcaklığı bileşiğinde korunan fare tümörleri kesildi (5 um kalınlığında kesitler) ve mikroskop lamlarına yapıştırıldı ve -80°C'de saklandı. Deneyin başlangıcında, lamlar havada kurutuldu ve soğuk asetonla yıkandı. Biotine nonspesifik bağlanmayı önlemek için Endogenous Avidin Biotin Blocking Kit (Thermo Fisher) kullanıldı. Ek olarak, arka plan lekelenmesini azaltmak için dokular %10 eşek serumu ile inkübe edildi. Kullanılan birincil antikorlar, anti-CD4, anti-CD8 ve anti-FOXP3 idi. AF-488'e konjüge edilmiş eşek anti-keçi ve eşek anti-sıçan ikincil antikorlar olarak kullanıldı ve slaytlar, biyotinlenmiş antikorları saptamak için Cy3-streptavidin ile inkübe edildi (Ek Tablo S5). Çekirdekler, DAPI (Thermo Fisher) ile zıt boyama yoluyla görselleştirildi. Görüntüler, tüm slayt tarayıcı Olympus BX61VS (20 × 0.

          Tüm doku immünofloresan analizi için Visiopharm'dan VIS yazılımı kullanıldı. Analiz protokolü, Ek Malzemeler ve Yöntemler bölümünde ayrıntılı olarak açıklanmıştır. CC Ekstraksiyonu ve Analizi


          CC'deki polifenoller, %50 ve %90 MeOH içinde ekstre edildi ve Fracassetti ve meslektaşlarının ( 22 ) prosedürüne göre LC-MS ile analiz edildi . Her iki özden elde edilen süpernatanlar birleştirildi ve analizden önce süzüldü. 254 nm'de bağıl alıkonma sürelerini ve LC-MS analizimizden elde edilen negatif iyon kütle spektrumlarını, CC polifenollerinin yayınlanmış bir karakterizasyonundakilerle karşılaştırdık ( 22 ). Castalagin'in CC'de Aktif Bileşik Olarak Tanımlanması


          CC'deki hangi bileşiklerin antitümör aktivitesinden sorumlu olduğunu keşfetmek için CC, ekstraksiyon (0, 50 ve sonra %90 MeOH) veya ters faz kromatografisi ile fraksiyonlara ayrıldı (ayrıntılı açıklamalar için Ek Malzemeler ve Yöntemlere bakınız). Fraksiyonlar, aktif fraksiyonları belirlemek için MCA-205 sarkom fare modelinde yinelemeli olarak tarandı. Fluo-Castalagin Sentezi ve Saflaştırma


          Castalagin, 5/6-karboksifloresein süksinimidil ester (floresin-NHS) ile bir transesterifikasyon reaksiyonu yoluyla floresein ile tek fonksiyonlu hale getirildi. Kısaca, castalagin (3.2 umol/L), 200 uL dimetilformamid içinde çözündürüldü ve ardından trietilamin (2 eşd.) ve 4-dimetilaminopiridin (Sigma) varlığında flüoresan-NHS (2 eşd.) ile reaksiyona sokuldu. DOWEX 50WX8 reçinesi ile çalışmanın ardından ham karışım LC-MS ile analiz edildi. Tek işlevli fluo-castalagin'e karşılık gelen tepe noktaları, HPLC ile izole edildi. Bakteriyel Suşlar ve Kültür Koşulları


          Tüm bakteriler anaerobik koşullar altında 37°C'de anaerobik bir oda içinde büyütüldü (Coy Laboratuvar Ürünleri, %5 H2 , %20 C02 , %75 N2 ) . Ruminococcus bromii (ATCC 27255 suşu) ve Ruminococcus bicirculans (CRCHUM12 T suşu ), anaerob bazal besiyeri (ABB; Oxoid) agar plakalarında büyütüldü. Escherichia coli (CRCHUM10 suşu) ve Bacteroides thetaiotaomicron (CRCHUM9 suşu), %5 koyun kanı (Oxoid) içeren tripton soya agar üzerinde büyütüldü. R. bicirculans , B. thetaiotaomicron ve E. colilaboratuvarımızda melanomlu hastaların dışkılarından izole edilmiştir. Her bakterinin bir kolonisi, taze ABB ortamına aşılandı ve büyüme deneylerinin başlamasından önce 48 saat süreyle büyütüldü. Bakteriyel İzolatlar Üzerinde Fluo-Castalagin Etiketleme Deneyleri


          Sabit faz kültürleri, taze ABB ortamı (4 mL/koşul) içinde seyreltildi ve erken-orta üstel faza (OD 600 ≥ 0.2) büyütüldü . Bakteriler tanımlanmış bir minimum ortamda yıkandı (MM; Ek Malzemeler ve Yöntemler bölümündeki tarife bakın) ve ardından 176 uL MM içinde yeniden süspanse edildi.

          0°C'de etiketleme deneyleri için bakteriler, fluo-castalagin eklenmeden önce bir saat süreyle bir buz banyosunda inkübe edildi. Rekabet deneyleri için, fluo-castalagin ilavesinden önce 200 umol/L'lik bir nihai konsantrasyona kadar castalagin ilave edildi. Fluo-castalagin probu, 2 umol/L'lik bir nihai konsantrasyona ilave edildi ve 37°C'de (veya buz durumu için 0°C'de ) bir saat süreyle bakterilerle inkübe edildi . İnkübasyondan sonra bakteriler iki kez PBS içinde yıkandı ve ardından akış sitometrisi ve epifloresan mikroskopisi (aşağıda ayrıntılı olarak açıklanmıştır) ile analiz edildi. Fluo-Castalagin Etiketleme Deneyleri için Akış Sitometrisi Edinimi


          Fluo-castalagin etiketli bakterilerin akış sitometri analizi, mavi (488 nm) lazerle donatılmış bir LSRFortessa sitometre (BD Biosciences) üzerinde gerçekleştirildi. Mavi 695/40 alanlı kanal, arka plan kanalı olarak kullanıldı. Mavi 530/30-alanlı kanalda boyanmamış popülasyonun üzerinde bir kapı kuruldu ve 100.000 olay için sinyal ölçüldü. Geçit içindeki bakterilerin fluo-castalagin tarafından etiketlendiği kabul edildi. Fluo-Castalagin Etiketleme Deneyleri için Epifloresans Mikroskopisi Edinimi


          Fluo-castalagin etiketli bakteriler, %0.2 Gelzan (Sigma) pedleri olan bir lam üzerine yüklendi. Fluo-castalagin etiketli bakterilerin epifloresan mikroskopi görüntülemesi, sayısal açıklığı 1.40 olan 60x CFI Plan Apochromat faz kontrast hedefi ile donatılmış bir Nikon Ti2 mikroskobu kullanılarak gerçekleştirildi. Floresan görüntüleme, bir FITC filtre seti (470/24 nm uyarma, 525/50 nm emisyon) ile bir SpectraX aydınlatıcı (Lumencor) kullandı. Görüntüler bir Hamamatsu Orca Fusion CMOS kamera ile çekilmiştir. Görüntüler FIJI'de şu şekilde işlendi: görüntüler kırpıldı, floresan kanalından arka plan çıkarıldı ve floresan kanallarına özdeş bir arama tablosu uygulandı. 16S rRNA Analizi


          İzole edilmiş DNA, dışkı numunelerindeki mikrobiyal bileşimi araştırmak için 16S rRNA gen dizileri kullanılarak analiz edildi. Ayrıntılı prosedür, Ek Malzemeler ve Yöntemlerde açıklanmaktadır. Av Tüfeği Sıralama Analizi


          İzole edilmiş DNA, dışkı numunelerindeki mikrobiyal bileşimi araştırmak için pompalı dizileme kullanılarak analiz edildi. Ayrıntılı prosedür, Ek Malzemeler ve Yöntemlerde açıklanmaktadır. Kanser Olmayan Hastalarda CC Denemesi


          Bir CC klinik deneme çalışmasının ( NCT04058392 ) bir parçası olarak , saptanamayan viremi ile HIV ile yaşayan iki katılımcı, antiretroviral tedavilerine ek olarak dört hafta boyunca günde CC kapsülleri (toplam 1 g, Natural Traditions) almaya davet edildi. Dört haftalık CC alımından önce ve sonra her katılımcı tarafından dışkı toplandı ve -80°C'de donmadan önce maksimum 16 saat 4°C'de tutuldu.

          CC çalışması, Health Canada, Doğal ve Reçetesiz Sağlık Ürünleri Direktörlüğü ve McGill Üniversitesi Sağlık Merkezi araştırma etiği kurulu tarafından onaylandı (çalışma numarası 2020-5903). Her katılımcı çalışmaya girmeden önce yazılı bilgilendirilmiş onay verdi. Çalışma Helsinki Bildirgesi'ne uygun olarak yürütülmektedir. İstatistiksel analiz


          Mann-Whitney U testi, her bir numunedeki çeşitliliği gösteren alfa çeşitliliğini kullanarak farklı gruplar arasındaki anlamlı farklılıkları belirlemek için kullanıldı. DESeq2 ( 35 ), cins seviyesinde diferansiyel bolluk analizi yapmak için kullanıldı. Tüm Pdiferansiyel bolluk analizlerinin değerleri, Benjamini-Hochberg yöntemiyle çoklu karşılaştırmalar için ayarlanmıştır. Spearman sıra korelasyon testi, GraphPad Prism 8 kullanılarak elde edildi ve akış sitometrisi analiz parametreleri ile suda diferansiyel bolluk analizi ile tanımlanan önemli bakteriler arasındaki sürekli değişkenleri CC'ye karşı, su/αPD-1'e karşı CC/αPD-1'i karşılaştırmak için kullanıldı. , MCA-205 ve E0771 tümör modelleri için su/aPD-1'e karşı castalagin/αPD-1 ve su/IsoPD-1'e karşı castalagin/IsoPD-1 grupları. P değerleri, %95 güven aralıklarıyla iki taraflıydı: *, P < 0.05; **, P < 0.01; ***, P< 0,001. Castalagin antitümör doz-yanıt eğrisi, veriler GraphPad Prism 8'deki taban çizgisine göre ayarlanmış değişken eğim doz-yanıt denklemine uydurularak oluşturuldu. NR ve R'de castalagin metabolize edenlerin ve metabolize etmeyenlerin sıklığının analizi için Fisher kesin testi kullanıldı. GraphPad Prism 8'deki kohort hastaları. Veri Kullanılabilirliği Bildirimi


          Bu çalışmada gerçekleştirilen RNA-seq, metagenomik dizileme ve 16S rRNA dizilemeden üretilen ham okuma verileri, BioProject ID'nin PRJNA783624 (RNA-seq ve metagenomik dizileme) ve PRJNA706824 (16S rRNA dizileme) altında saklanır. Yeni oluşturulan 5.0M yedeksiz fare bağırsağı mikrobiyal gen kataloğu ve bunlardan yeniden yapılandırılmış ilişkili Metagenomik Türler Pan-genomları, veri tabanı INRAE-MGP ( https://doi.org/10.15454/L11MXM ) aracılığıyla mevcuttur .


          Git: Ek materyal

          Ek Şekil

          Ek veri dosyası için buraya tıklayın. (11M, pdf)
          Git: teşekkürler


          CRCHUM'un moleküler patoloji çekirdek tesisinden Liliane Meunier ve Véronique Barrès'e mikroskop slayt taramasını gerçekleştirdikleri için teşekkür ederiz. CRCHUM hayvan tesisine, Montreal Klinik Araştırma Enstitüsü (IRCM) hayvan tesisine ve CRCHUM'un deneysel görüntüleme çekirdek tesisinden Aurélie Cleret-Buhot'a şekiller için görüntü analizi ve immünofloresan görüntüleri gerçekleştirdikleri için teşekkür ederiz. Ayrıca, IBIS'den (Institut de Biologie Intégrative et des Systèmes, Université Laval) Thibeault Varin'e 16S rRNA dizileme konusundaki yardımları için teşekkür ederiz. Bu çalışma, Institut du Cancer de Montréal tarafından mali olarak desteklenmiştir (M. Messaoudene ve B. Routy'ye); Kanada Sağlık Araştırma Enstitüsü (B. Routy ve B. Castagner'a); Prefontaine Ailesi ve Fondation du CHUM (B. Routy'ye); Terapötik Kimya Kanada Araştırma Başkanı (B. Castagner'a); Réseau de Therapie cellulaire, Tissulaire et Génique du Québec (ThéCell; B. Routy'ye); Kanada 150 Bakteriyel Hücre Biyolojisi Araştırma Başkanı (YV Brun'a); Fonds de la Recherche Québec-Santé (FRQ-S): Réseau SIDA/Maladies infectieuses, Thérapie cellulaire, and the Vaccines and Immunotherapies Core of the CIHR Canadian HIV Trials Network (CTN; grant CTN 247; to S. Isnard); CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). Tissulaire et Génique du Québec (ThéCell; B. Routy'ye); Kanada 150 Bakteriyel Hücre Biyolojisi Araştırma Başkanı (YV Brun'a); Fonds de la Recherche Québec-Santé (FRQ-S): Réseau SIDA/Maladies infectieuses, Thérapie cellulaire, and the Vaccines and Immunotherapies Core of the CIHR Canadian HIV Trials Network (CTN; grant CTN 247; to S. Isnard); CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). Tissulaire et Génique du Québec (ThéCell; B. Routy'ye); Kanada 150 Bakteriyel Hücre Biyolojisi Araştırma Başkanı (YV Brun'a); Fonds de la Recherche Québec-Santé (FRQ-S): Réseau SIDA/Maladies infectieuses, Thérapie cellulaire, and the Vaccines and Immunotherapies Core of the CIHR Canadian HIV Trials Network (CTN; grant CTN 247; to S. Isnard); CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). Fonds de la Recherche Québec-Santé (FRQ-S): Réseau SIDA/Maladies infectieuses, Thérapie cellulaire, and the Vaccines and Immunotherapies Core of the CIHR Canadian HIV Trials Network (CTN; grant CTN 247; to S. Isnard); CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). Fonds de la Recherche Québec-Santé (FRQ-S): Réseau SIDA/Maladies infectieuses, Thérapie cellulaire, and the Vaccines and Immunotherapies Core of the CIHR Canadian HIV Trials Network (CTN; grant CTN 247; to S. Isnard); CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e). CIHR'den ve Fondation JA De Sève'den (A. Marette'e) kuruluş programı hibesi; Diyabet ve kardiyovasküler hastalıkların patogenezini incelemek için Pfizer araştırma fonu (A. Marette'e); Fonds de recherche du Québec–Santé (FRQS), FRQS junior I kariyer ödülleri (B. Routy'ye); FRQS doktora sonrası araştırma bursu (303637; C. Richard'a); Avrupa Birliği Oncobiome (G. Kroemer'e); ve Seerave Vakfı (G. Kroemer'e).

          Bu makalenin basım masrafları sayfa ücretlerinin ödenmesiyle kısmen karşılanmıştır. Bu nedenle bu makale , yalnızca bu gerçeği belirtmek için 18 USC Bölüm 1734 uyarınca burada reklam olarak işaretlenmelidir .

          Git: Dipnotlar


          Not: Bu makale için ek veriler, Cancer Discovery Online'da (http://cancerdiscovery.aacrjournals.org/) mevcuttur.


          Git: Yazarların Açıklamaları


          M. Messaoudene, beklemede olan G17004-00006-AD (anti kanser etkinliği ve bağışıklık kontrol noktası inhibitörlerine yanıtı artırmak için castalagin veya bunun analoglarının kullanımı) için bir patent bildirir. R. Pidgeon, çalışmanın yürütülmesi sırasında Kanada Sağlık Araştırma Enstitülerinden hibeler ve kişisel ücretler, Weston Family Foundation ve Canadian Glycomics Network'ten (GlycoNet) bağışlar ve Fonds de recherche du Quebec'ten (Santé; FRQS) kişisel ücretler bildirir; sunulan çalışma dışında Micropredictome'dan (2018-2019 kurucu ortağı) diğer destekler; ve beklemede olan G17004-00006-AD patenti (anti kanser etkinliği için ve bağışıklık kontrol noktası inhibitörlerine yanıtı artırmak için castalagin veya bunun analoglarının kullanımı). S. Isnard, çalışmanın yürütülmesi sırasında Kanada HIV Araştırmaları Ağı'ndan bağışlar aldığını bildirdi. D. Raoult, sunulan çalışmanın dışında Eurofins ve Culturetop'tan başka destekler olduğunu bildirdi. G. Kroemer, çalışmanın yürütülmesi sırasında Agence Nationale de Recherche, Institut Nationale du Cancer, Ligue National contre le Cancer ve Cancéropôle Ile de France'dan hibe aldıklarını bildirdi; sunulan çalışmanın dışında Daiichi Sankyo, Eleor, Kaleido, Lytix Pharma, PharmaMar, Samsara, Sanofi, Sotio, Vascage ve Vasculox/Tioma'dan sağlanan hibeler; Fransa Bristol Myers Squibb Vakfı'nın Yönetim Kurulu üyesidir ve Everimmune, Samsara Therapeutics ve Therafast Bio'nun bilimsel kurucu ortaklarından biridir. A. Elkrief, gönderilen çalışmanın dışında Kanada Sağlık Araştırma Enstitüleri, Kraliyet Doktorlar ve Kanada Kraliyet Koleji ve Henry R. Shibata Ödülü'nden başka destekler olduğunu bildirdi. A. Marette, çalışmanın yürütülmesi sırasında Weston Vakfı'ndan bağış aldığını bildirdi. B. Castagner, beklemede olan G17004-00006-AD (anti kanser etkinliği ve bağışıklık kontrol noktası inhibitörlerine yanıtı artırmak için castalagin veya bunun analoglarının kullanımı) için bir patent bildirir. B. Routy, sunulan çalışma dışında Davoltera, Kaleido ve Vedanta'dan hibeler ve ayrıca G17004-00006-AD için bir patent (anti kanser etkinliği ve bağışıklık kontrol noktası inhibitörlerine yanıtı artırmak için castalagin veya bunun analoglarının kullanımı) beklemede olduğunu bildiriyor. . Diğer yazarlar tarafından herhangi bir açıklama yapılmadı. yanı sıra G17004-00006-AD için bir patent (anti kanser etkinliği için castalagin veya bunun analoglarının kullanımı ve bağışıklık kontrol noktası inhibitörlerine yanıtı arttırmak için) beklemede. Diğer yazarlar tarafından herhangi bir açıklama yapılmadı. yanı sıra G17004-00006-AD için bir patent (anti kanser etkinliği için castalagin veya bunun analoglarının kullanımı ve bağışıklık kontrol noktası inhibitörlerine yanıtı arttırmak için) beklemede. Diğer yazarlar tarafından herhangi bir açıklama yapılmadı.

          Git: Yazar katkıları


          M. Messaoudene: Kavramsallaştırma, kaynaklar, veri iyileştirme, biçimsel analiz, denetim, finansman sağlama, doğrulama, araştırma, görselleştirme, metodoloji, yazma–orijinal taslak, proje yönetimi, yazma–inceleme ve düzenleme. R. Pidgeon: Kaynaklar, resmi analiz ve metodoloji. C. Richard: Resmi analiz, doğrulama ve metodoloji. M. Ponce: Soruşturma. K. Diop: Soruşturma. M. Benlaifaoui: Soruşturma. A. Nolin-Lapalme: Biçimsel analiz. F. Cauchois: Soruşturma. J. Malo: Soruşturma. W. Belkaid: Soruşturma. S. Isnard: Kaynaklar.Y. Fradet: Yazma–inceleme ve düzenleme. L. Dridi: Soruşturma. D. Velin: Biçimsel analiz, inceleme, yazma-inceleme ve düzenleme. P. Oster: Resmi analiz ve soruşturma. D. Raoult: Kaynaklar. F. Ghiringhelli: Kaynaklar, yazma–inceleme ve düzenleme. R. Boidot: Soruşturma ve metodoloji. S. Chevrier: Soruşturma. DT Kysela: Soruşturma. YV Brun: Soruşturma, yazma-inceleme ve düzenleme. E. Falcone: Kaynaklar. G. Pilon: Soruşturma. F. Plaza Onate: Yazılım, araştırma, metodoloji.O. Gitton-Quent: Yazılım, inceleme, metodoloji. E. Le Chatelier: Yazılım, araştırma ve metodoloji. S. Durand: Kaynaklar, resmi analiz, soruşturma ve metodoloji. G. Kroemer: Kaynaklar, metodoloji, yazma-inceleme ve düzenleme. A. Elkrief: Yazma–inceleme ve düzenleme. A. Marette: Kaynaklar, araştırma, metodoloji, yazma-inceleme ve düzenleme. B. Castagner: Kaynaklar, biçimsel analiz, araştırma, metodoloji, yazma-inceleme ve düzenleme. B. Rota:Kavramsallaştırma, kaynaklar, biçimsel analiz, denetim, finansman sağlama, doğrulama, araştırma, görselleştirme, metodoloji, yazma–orijinal taslak, proje yönetimi, yazma–inceleme ve düzenleme.

          Git: Referanslar

          1. Elkrief A, Joubert P, Florescu M, Tehfe M, Blais N, Routy B. 2020'de Kanada'da metastatik küçük hücreli dışı akciğer kanserinin terapötik manzarası . Curr Oncol Tor Ont 2020; 27 :52–60. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          2. Gandhi L, Rodríguez-Abreu D, Gadgeel S, Esteban E, Felip E, De Angelis Fet al.. Metastatik küçük hücreli dışı akciğer kanserinde pembrolizumab artı kemoterapi . N İngilizce J Med 2018; 378 :2078–92. [ PubMed ] [ Google Akademik ]
          3. Motzer RJ, Tannir NM, McDermott DF, Arén Frontera O, Melichar B, Choueiri TKet al.. İleri renal hücreli karsinomda nivolumab artı ipilimumab'a karşı sunitinib . N İngilizce J Med 2018; 378 :1277–90. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          4. Pitt JM, Vétizou M, Daillère R, Roberti MP, Yamazaki T, Routy Bet al.. Kanserde immün kontrol noktası blokajına karşı direnç mekanizmaları: tümörün içsel ve dışsal faktörleri . Bağışıklık 2016; 44 :1255–69. [ PubMed ] [ Google Akademik ]
          5. Chen DS, Mellman I. Kanser bağışıklığının unsurları ve kanser bağışıklığı ayar noktası . Doğa 2017; 541 :321–30. [ PubMed ] [ Google Akademik ]
          6. Routy B, Gopalakrishnan V, Daillère R, Zitvogel L, Wargo JA, Kroemer G. Bağırsak mikrobiyotası antikanser immün gözetimi ve genel sağlığı etkiler . Nat Rev Clin Oncol 2018; 15 :382–96. [ PubMed ] [ Google Akademik ]
          7. Elkrief A, El Raichani L, Richard C, Messaoudene M, Belkaid W, Malo Jet al.. Antibiyotikler, immün kontrol noktası inhibitörleri ile tedavi edilen ilerlemiş melanom hastalarının progresyonsuz sağkalımının azalmasıyla ilişkilidir . Onkoimmünoloji 2019; 8 :e1568812. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          8. Wilson BE, Routy B, Nagrial A, Chin VT. Antibiyotiklerin immün kontrol noktası blokajındaki klinik sonuçlar üzerindeki etkisi: gözlemsel çalışmaların sistematik bir incelemesi ve meta-analizi . Kanser Immunol Immunother CII 2020; 69 :343–54. [ PubMed ] [ Google Akademik ]
          9. Derosa L, Hellmann MD, Spaziano M, Halpenny D, Fidelle M, Rizvi Het al.. İlerlemiş renal hücreli ve küçük hücreli dışı akciğer kanseri olan hastalarda immün kontrol noktası inhibitörlerinin klinik aktivitesi üzerinde antibiyotiklerin negatif ilişkisi . Ann Oncol 2018; 29 :1437–44. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          10. Routy B, Le Chatelier E, Derosa L, Duong CPM, Alou MT, Daillère Ret al.. Bağırsak mikrobiyomu, epitelyal tümörlere karşı PD-1 bazlı immünoterapinin etkinliğini etkiler . Bilim 2018; 359 :91–7. [ PubMed ] [ Google Akademik ]
          11. Matson V, Fessler J, Bao R, Chongsuwat T, Zha Y, Alegre M-Let al.. Kommensal mikrobiyom, metastatik melanom hastalarında anti-PD-1 etkinliği ile ilişkilidir . Bilim 2018; 359 :104–8. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          12. Gopalakrishnan V, Spencer CN, Nezi L, Reuben A, Andrews MC, Karpinets TVet al.. Bağırsak mikrobiyomu, melanom hastalarında anti-PD-1 immünoterapiye yanıtı modüle eder . Bilim 2018; 359 :97–103. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          13. Derosa L, Routy B, Fidelle M, Iebba V, Alla L, Pasolli E ve diğerleri. Bağırsak bakteri bileşimi, renal hücreli karsinom hastalarında kanser immünoterapisine birincil direnci yönlendirir . Avro Urol 2020; 78 :195–206. [ PubMed ] [ Google Akademik ]
          14. Tanoue T, Morita S, Plichta DR, Skelly AN, Suda W, Sugiura Yet al.. Tanımlanmış bir kommensal konsorsiyum, CD8 T hücrelerini ve anti-kanser bağışıklığını ortaya çıkarır . Doğa 2019; 565 :600–5. [ PubMed ] [ Google Akademik ]
          15. Hakozaki T, Richard C, Elkrief A, Hosomi Y, Benlaïfaoui M, Mimpen Iet al.. Bağırsak mikrobiyomu, ilerlemiş küçük hücreli dışı akciğer kanseri olan hastalarda bağışıklık kontrol noktası inhibisyonu sonuçlarıyla ilişkilendirilir . Kanser İmmünol Res 2020; 8 :1243–50. [ PubMed ] [ Google Akademik ]
          16. Helmink BA, Khan MAW, Hermann A, Gopalakrishnan V, Wargo JA. Mikrobiyom, kanser ve kanser tedavisi . Nat Med 2019; 25 :377–88. [ PubMed ] [ Google Akademik ]
          17. Daillère R, Derosa L, Bonvalet M, Segata N, Routy B, Gariboldi Met al.. Deneme saati: Antikanser immünoterapinin klinik etkinliğini artırmak için bir araç olarak bağırsak mikrobiyotası . Onkoimmünoloji 2020; 9 :1774298. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          18. Baruch EN, Youngster I, Ben-Betzalel G, Ortenberg R, Lahat A, Katz Let al.. Fekal mikrobiyota nakli, immünoterapiye dirençli melanom hastalarında yanıtı teşvik eder . Bilim 2021; 371 :602–9. [ PubMed ] [ Google Akademik ]
          19. Anhê FF, Nachbar RT, Varin TV, Trottier J, Dudonné S, Le Barz Met al.. Camu camu (Myrciaria dubia) ile tedavi, bağırsak mikrobiyotasını değiştirerek ve diyete bağlı obez farelerde enerji harcamasını artırarak obeziteyi önler . Bağırsak 2019; 68 :453–64. [ PubMed ] [ Google Akademik ]
          20. Bourgeois-Daigneault MC, St-Germain LE, Roy DG, Pelin A, Aitken AS, Arulanandam Ret al.. Göğüs kanseri tedavisi için başarılı bir strateji olarak paklitaksel ve MG1 onkolitik virüs kombinasyonu . Göğüs Kanseri Araştırması 2016; 18:83 . [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          21. Vétizou M, Pitt JM, Daillère R, Lepage P, Waldschmitt N, Flament Cet al.. CTLA-4 blokajı ile antikanser immünoterapi, bağırsak mikrobiyotasına dayanır . Bilim 2015; 350 :1079–84. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          22. Fracassetti D, Costa C, Moulay L, Tomás-Barberán FA. Camu-camu meyvesinden (Myrciaria dubia) elde edilen iki toz ürünün ellagik asit türevleri, ellagitanninler, proantosiyanidinler ve diğer fenolikler, C vitamini ve antioksidan kapasitesi . Gıda Kimyası 2013; 139 :578–88. [ PubMed ] [ Google Akademik ]
          23. Oster P, Vaillant L, Riva E, McMillan B, Begka C, Truntzer Cet al.. Helicobacter pylori enfeksiyonu, kanser immünoterapilerinin etkinliği üzerinde zararlı bir etkiye sahiptir . Gut 202121 Temmuz [Epub baskıdan önce]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          24. Selma MV, Beltrán D, Luna MC, Romo-Vaquero M, García-Villalba R, Mira Aet al.. Ellagik asitten biyoaktif metabolit izourolitin a üretebilen insan bağırsak bakterilerinin izolasyonu . Ön Mikrobiyol 2017; 8 :1521. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          25. Derosa L, Routy R, Maltez Thomas A, Iebba V, Zalcman G, Friard Set al.. Intestinal Akkermansia muciniphila , ilerlemiş küçük hücreli dışı akciğer kanseri olan hastalarda PD-1 blokajına klinik yanıtı öngörür . Nat Med 20223 Şubat [Epub baskıdan önce]. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          26. Isnard S, Fombuena B, Ouyang J, Royston L, Lin J, Bu Set al.. Camu Camu Study Group. HIV ile yaşayan ART ile tedavi edilen kişilerde mikrobiyal translokasyon ve sistemik immün aktivasyon üzerindeki Camu Camu etkileri: tek kollu, randomize olmayan Camu Camu prebiyotik pilot çalışmasının protokolü (CIHR/CTN PT032) . BMJ Açık 2022; 12 :e053081. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          27. van Heumen BWH, Roelofs HMJ, Te Morsche RHM, Marian B, Nagengast FM, Peters WHM. Selekoksib ve tauro-ursodeoksikolik asit birlikte tedavisi, ailesel adenomatöz polipozdan türetilmiş LT97 kolon adenoma hücrelerinde hücre büyümesini inhibe eder . Exp Cell Res 2012; 318 :819–27. [ PubMed ] [ Google Akademik ]
          28. Ma C, Han M, Heinrich B, Fu Q, Zhang Q, Sandhu Met al.. Bağırsak mikrobiyomu aracılı safra asidi metabolizması, karaciğer kanserini NKT hücreleri aracılığıyla düzenler . Bilim 2018; 360 :eaan5931. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          29. Haslam E. İlaç olarak doğal polifenoller (bitkisel tanenler): olası etki biçimleri . J Nat Prod 1996; 59 :205–15. [ PubMed ] [ Google Akademik ]
          30. Kuhn P, Kalariya HM, Poulev A, Ribnicky DM, Jaja-Chimedza A, Roopchand DE ve diğerleri. Üzüm polifenolleri, farelerde metabolik sendromun gelişmesiyle ilişkili bağırsakta lokalize reaktif oksijen türlerini azaltır . PLoS Bir 2018; 13 :e0198716. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          31. Imlay JA. Bakteriler dünyanın neresinde oksidatif stres yaşıyor? Çevre Mikrobiol 2019; 21 :521–30. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          32. Khademian M, Imlay JA. Escherichia coli sitokrom c peroksidaz, hidrojen peroksidin terminal elektron alıcısı olarak kullanılmasını sağlayan bir solunum oksidazdır . Proc Natl Acad Sci ABD 2017; 114 :E6922–31. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          33. Perron NR, Brumaghim JL. Demir bağlanmasıyla ilgili polifenol bileşiklerinin antioksidan mekanizmalarının gözden geçirilmesi . Hücre Biyokimyası Biyofiz 2009; 53 :75–100. [ PubMed ] [ Google Akademik ]
          34. Davar D, Dzutsev AK, McCulloch JA, Rodrigues RR, Chauvin JM, Morrison RMet al.. Fekal mikrobiyota nakli, melanom hastalarında anti-PD-1 tedavisine direncin üstesinden gelir . Bilim 2021; 371 :595–602. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          35. Love MI, Huber W, Anders S. DESeq2 ile RNA-seq verileri için kat değişimi ve dağılımının modere edilmiş tahmini . Genom Biol 2014; 15 :550. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]

          Yorum yap


          • #6
            Camu Camu ( Myrciaria dubia (Kunth) McVaugh): Biyofonksiyonel Özelliklere Sahip Bir Amazon Meyvesi – Bir İnceleme

            Juliana María García-Chacón , † Juan Camilo Marín-Loaiza , ‡ ve Coralia Osorio *
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            † Departamento de Química, Universidad Nacional de Colombia, AA 14490 Bogota, Kolombiya
            ‡ Departamento de Farmacia, Universidad Nacional de Colombia, AA 14490 Bogota, Kolombiya
            Sorumlu yazar.
            * Telefon: +57-1-3165000, dahili. 14472. Faks: +57-1-3165220. E-posta: oc.ude.lanu@roirosoc .
            Git: Soyut


            Amazon Camu camu meyvesi ( Myrciaria dubia (Kunth) McVaugh), polifenoller, karotenoidler ve C vitamini gibi yüksek düzeyde biyoaktif ve antioksidan bileşikleri nedeniyle "süper meyve" olarak adlandırılmıştır. kabuk ve tohumlar), çeşitli in vitro ve in vivo yöntemlerle iyi bir şekilde oluşturulmuştur.çalışmalar. Birkaç rapor, camu camu özlerinin veya gıda türevli ürünlerinin besleyici ve biyofonksiyonel değerini doğruladı, antioksidan, antihiperglisemik, antihipertansif ve antiobezite aktivitesi sergileyerek yaşam kalitesinin iyileştirilmesine katkıda bulundu. Diğer çalışmalar, antimikrobiyal, antiinflamatuar, antiproliferatif, antihepatotoksik, antihemolitik, antimutajenik ve hücre gençleştirme biyoaktivitelerini göstermiştir. Bu İnceleme, bazı fizyolojik modülasyon süreçlerinin anlaşılması yoluyla camu camu meyvesinin biyoaktif profilini ve sağlık yararları sergileyen biyofonksiyonel gıda bileşenlerinin geliştirilmesi kapsamında Amazon biyoekonomisine katkısını özetlemektedir.

            Git: giriiş


            Camu camu ( Myrciaria dubia (Kunth) McVaugh), Amazon bölgesinde Brezilya, Peru, Kolombiya ve Venezuela'dan yaygın olarak bulunan bir Myrtaceae meyvesidir. 1 Bir ila dört tohum içeren yuvarlak meyveleri yaklaşık 2,5 cm çapındadır. Olgunlaşmadığında, M. dubia meyve epikarpı yeşildir; daha sonra olgunlaşma sürecinde antosiyaninler ve diğer fenolik bileşiklerin varlığından dolayı renk kırmızı-mora dönüşür. 2 Camu camu, yağ asitleri, bazı amino asitler, uçucu bileşikler, mineraller ve C vitamini gibi vitaminlerden oluşan karmaşık bir matris olarak kabul edilir. 3 , 4 Antosiyaninler (siyanidin-3- O -glikozit ve delfinidin-3- O)-glucoside), flavonoller (myricetin, quercetin), ellagitannins (ellagik asit ve türevleri), proantosiyanidinler ve karotenoidler (lutein, β-karoten, violaxanthin ve luteoxanthin) de camu camu kimyasal profilinin bir parçasıdır. 5 , 6

            Kardiyovasküler hastalık, obezite ve tip 2 diabetes mellitus gibi en yaygın bulaşıcı olmayan hastalıklar genellikle geleneksel ilaçlarla tedavi edilir. Bununla birlikte, C vitamini, karotenoidler ve/veya polifenoller açısından zengin meyve ve sebzelerin tüketilmesinin, doğal antioksidan görevi gördükleri için bu hastalıklara yakalanma riskini azalttığı bilinmektedir. Son yıllarda dikkatleri üzerine çeken Myrtaceae familyasına ait yenilebilir meyveler buna bir örnektir. 7 Bu nedenle, camu camu ( M. dubia ) ​​gibi bazı tropikal meyvelerde bulunan biyoaktif bileşiklerin kimyasal profili, ilaca dayalı tedavinin yerine bazı metabolik hastalıkları tedavi etmek ve önlemek için doğal kaynakların araştırılmasına yol açmıştır. 8 Bu şekilde doğrulanmıştır.M. dubia , tip 2 diyabet, metabolik sendrom, obezite ve hipertansiyon gibi bazı bulaşıcı olmayan kronik hastalıkları ve iltihaplanmalar , mutasyonlar ve kromozom hasarı gibi oksidatif stresle ilgili durumları potansiyel olarak önleyebilen sağlığa yararlı yüksek özelliklere sahiptir. , diğerleri arasında. 8 , 9 , 11

            Camu camu'nun toplam ağırlığı %60 kağıt hamuru ve %40 tohum ve kabuk gibi yan ürünlerden oluşur. 2 Tohumları bile toplam ağırlığın %20'sini oluşturur. 11 M. dubia meyvelerinin bütün parçaları, camu camu'nun fonksiyonel karakterizasyonuna katkıda bulunan önemli biyoaktif bileşikler göstermiştir. 5 Böylece, M. dubia meyvesinin tamamının veya herhangi bir kısmının kimyasal profilinin değerlendirilmesi, koruma kapasitesini, gıda stabilitesini ve besin değerini teşvik ederek, sürdürülebilir süreçlerin ve katma değeri yüksek ürünlerin geliştirilmesine izin vererek, ticari hale getirir. camu camu ekimi uygulanabilir bir diyet, fonksiyonel ve ekonomik bir alternatiftir. 2 , 12

            Son on yılda, gıda endüstrisi ve nihai müşterileri, sağlık açısından yararlı iddiaları olan egzotik ve yerel kaynaklı gıda ürünleri geliştirmek, üretmek ve tüketmekle daha fazla ilgilendiler. Bu kalite standardı, fonksiyonel biyolojik özellikleri belirlemek için meyvelerin ve biyokimyasal bileşiklerin uygun şekilde değerlendirilmesini gerektirir. Bu İnceleme, antioksidan kapasitesi ve antihiperglisemik, antihipertansif ve antiobezite aktivitelerine odaklanan bir gıda ürünü olarak kullanımına izin veren camu camu meyvesinin kabuğu, tohumları ve özünde bildirilen biyofonksiyonel özellikler hakkında güncel bilgiler sağlamayı amaçlamaktadır.

            Git: Metodoloji


            Bu İncelemedeki literatür, Ocak 2010 ile Kasım 2022 arasında hakemli dergilerde yayınlanan ve SciFinder, Science Direct, Google Scholar ve Wiley dahil olmak üzere elektronik veritabanlarının yanı sıra resmi Web siteleri kullanılarak incelenen orijinal İngilizce araştırma makalelerini içermektedir. sağlık kuruluşları, hastalıkların acı çekmesine ilişkin güncel rakamları rapor edecek. Arama sonuçları “ Myrciaria dubia” gibi anahtar kelimeler kullanılarak elde edilmiştir.”, “camu camu sağlık”, “camu camu'da biyoaktif maddeler” veya “camu camu gıda” olmak üzere toplam 70 yayın bulundu. Bu İnceleme, meyvenin kimyasal bileşimini, özellikle biyoaktif bileşikleri ve sağlık yararları ile birlikte biyofonksiyonel özelliklerini vurgulayan iki ana bölüm içermektedir. Benzer şekilde, ilk kez, meyvenin eti, kabuğu ve çekirdeği arasında metabolik sendrom hastalıklarının önlenmesi ile ilişkili biyofonksiyonellikler tartışıldı. Diğer sağlıkla bağlantılı ve toksik biyoaktiviteler bu İncelemede özetlenmiştir. Ayrıca, bu İnceleme, M. dubia'nın besinsel ve biyofonksiyonel değerini vurgulamaktadır.bulunduğu yere, olgunluk evrelerine, meyvenin bölümlerine ve gıda kaynaklı ürünlere göre. Camu camu'nun sağlığı geliştirici özelliklerine olan ilgi son yıllarda arttığından, bu İnceleme hem in vitro hem de in vivo yayınlara odaklanmaktadır .

            Git: Camu Camu'nun Biyofonksiyonel Bileşiklerinin Ana Grupları


            Fenolik bileşikler, C vitamini ve karotenoidler, M. dubia küspesinde, kabuğunda ve tohumlarında başlıca biyoaktif bileşikler olarak rapor edilmiştir . Önceki çalışmalar, orijin, iklim koşulları, olgunluk aşaması, hasat zamanı, toprak sulama, toprak tipi ve ışığa ve sıcaklığa doğrudan maruz kalma gibi dış faktörlerin camu camu'daki biyoaktif bileşiklerin toplam bileşimini etkilediğini bildirdi. 13 - 15 Olgunluğun doğası gereği camu camu'daki önemli miktarlardaki biyoaktif bileşiklerle ilişkili olduğu bilinmektedir; sonuç olarak, daha fazla biyofonksiyonel aktivite beklenmektedir. 7 Ayrıca, toplam fenolik bileşiklerin, karotenoidlerin ve askorbik asit içeriklerinin düzenli olarak azalması, meyve olgunlaşması sırasındaki katabolik reaksiyonlardan kaynaklanmaktadır.6 Bu nedenle, doğru bir kimyasal bileşimi bilmek için farklı hasat bölgelerinden camu camu'nun değerlendirilmesi çok önemlidir. Daha sonra, daha uzun meyve raf ömrü sağlayan ve yeterli biyoaktif bileşik stabilitesi sağlayan taze camu camu'ya kurutma teknikleri uygulanmıştır. 5 , 14 Örneğin, dondurarak kurutma ve püskürterek kurutma gibi dehidrasyon teknikleri, camu camu biyofonksiyonel özelliklerine dayalı yeni gıda açısından sağlıklı alternatifler oluşturmak için kullanılmıştır,2 bunlardan bazıları bu İnceleme sırasında ele alınmıştır.

            Öte yandan, M. dubia'daki biyoaktif bileşiklerin ekstraksiyonu genellikle organik bir çözücü ile gerçekleştirilmiştir. Bileşikler, titrimetri, spektrofotometrik yöntemler (Folin-Ciocalteu gibi), sıvı kromatografi-kütle spektrometrisi (LC-MS) ve son olarak, biyofonksiyonel faaliyetlerden sorumlu olanları belirlemeye ve nicelendirmeye izin veren istatistiksel analiz ile analiz edilebilir. 16 − 18 Her adım avantaj ve dezavantajları içerir. Örneğin, ekstraksiyon sırasında, örneğin çözücü sistemi, ekstraksiyon tekniği ve fizikokimyasal özellikleri, biyoaktif bileşiklerin stabilitesini ve korunmasını doğrudan etkiler. 5Titrimetrik teknikler gibi analitik yöntemler, kişinin C vitamini içeriğini belirlemesine izin verir ve spektrofotometrik yöntemler, kişinin fenolik ve karotenoid içeriğini ölçmesine olanak tanır. Her iki teknik de hızlı, karmaşık olmayan ve ekonomiktir, ancak C vitamini kolayca oksitlenir, bu da ölçüm hatalarına neden olur ve spektrofotometrik teknikler biyoaktif bileşiklerin tanımlanmasına izin vermez. 16 , 18 Sıvı kromatografi daha fazla doğruluk, seçicilik ve hassasiyet sunsa da, yine de daha yüksek işletme maliyetli bir tekniktir ve örnek verimi sınırlıdır. 18Bu anlamda, analiz sırasında yeterli performans, meyvenin daha iyi biyokimyasal olarak anlaşılmasını sağlar. Camu camu'daki en seçkin biyoaktif bileşiklerin daha ayrıntılı bir açıklaması şu şekilde sunulmuştur:Figür​Şekil 11.
            Resim, çizim vb. içeren harici bir dosya. Nesne adı: ao2c07245_0001.jpg
            Şekil 1
            Camu camu ( Myrciaria dubia ) ​​meyve biyoişlevsellikleri ile ilgili ümit verici biyoaktif bileşikler. karotenoidler


            Camu camu'daki toplam karotenoid içeriği Tablo l' de gösterilmektedir . Karotenoid içeriği camu camu hamurunda 619.98 ± 68.01 mg β-karoten/100 g 8 ve kabuklu tohumlarda 14.34 ± 0.72 mg eşdeğer β-karoten/100 g olarak bildirilmiştir . 19 Karotenoid profili, majör karotenoid olarak all- trans -lutein (601.9 ± 92.5 μg/100 g) ve ardından β-karoten (142.3 ± 23.7 μg/100 g) ve violaksantin ( 115,6 ± 62,4 μg/100 g). 20Veriler, camu camu'daki karotenoid konsantrasyonunun hamur ve kabukta olgunlukla azalma eğiliminde olduğunu gösterdi. Karotenoid konsantrasyonu, camu camu hamurunda kabuktan daha düşüktü ve olgunlaşma sürecinde ca. Kabukta 6,00 ila 1,00 mg/100 g ve yakl. Hamurda 300 ila 133 μg/100 g. 21 Aynı çalışmalar, camu camu kabuğunda görsel olarak sarı renk tespit edilmemesine rağmen, meyvede karotenoidlerin bulunduğunu göstermiştir. 6 Karotenoidlerin, kardiyovasküler hastalıklar (CVD'ler) ve kanser gibi bazı hastalıkları önleme ve tedavi etmede potansiyel sağlığı geliştirici bileşikler olduğu bilinmektedir. 15Karotenoid biyoyararlanımıyla ilgili daha ileri çalışmaların, camu camu'nun sağlığı teşvik edici özellikleri üzerindeki etkisini tanımlaması beklenmektedir. tablo 1

            Camu Camu ( Myrciaria dubia ) ​​Meyvesindeki Biyoaktif Bileşikler a
            hamur
            Püskürtmeli kurutulmuş kağıt hamuru numara 3,51 ± 0,97 gr AA/100 gr 48,54 ± 0,28 mg/100 gr 5,60 ± 0,11 mg/100 gr 19,63 ± 0,60 mg C3G/100 gr Fracassetti ve diğerleri, 2013 5
            Dondurulmuş kağıt hamuru numara 1889 ± 68 mg/100 gr 24.900 ± 140 mg CAE/100 gr 737 ± 18 mg/100 gr nd de Souza Schmidt Gonçalves ve diğerleri, 2014 37
            taze küspe numara 150,3 ± 0,2 AAE mg/g 81,6 ± 6,5 GAE mg/g numara numara Fujita ve diğerleri, 2015 9
            taze küspe 0,10 mg/100 gr 4752,23 mg AA/100 gr 12798,80 mg GAE/100 gr numara 170.00mg/100g Neves ve diğerleri, 2015 6
            Dondurularak kurutulmuş hamur numara 123,0 ± 0,1 AAE mg/g 67,1 ± 6,4 GAE mg/g numara numara Fujita ve diğerleri, 2015 9
            Liyofilize ve sulandırılmış 2919 ± 55 mg/100 gr numara 141,2 ± 3,9 mg/g numara 13,6 ± 1,3 μg/g Grigio ve diğerleri, 2017 30
            liyofilize numara numara 4,32 ± 0,03 mg/g numara 1,0 ± 0,001 mg C3G/g Conceição ve diğerleri, 2020 2
            Olgun taze hamur 133 mikrogram/100 gr 6,289 mg/100 gr 7,916 gr CAE/100 gr numara 2513,28 mikrogram/100 gr Grigio ve diğerleri, 2021 21
            Soymak
            taze kabuk 0,60 mg/100 gr 5178,49 mg AA/100 gr 14854.00 mg GAE/100 gr numara 170.00mg/100g Neves ve diğerleri, 2015 6
            Liyofilize ve sulandırılmış 3068 ± 135 mg/100 gr numara 98,1 ± 0,6 mg/g numara 107,2 ± 2,6 μg/g Grigio ve diğerleri, 2017 30
            Olgun genotip-44 105,88 ± 0,25 mg/100 gr 24,02 ± 0,18 gr/100 gr 881,46 ± 88,68 mg GAE/100 gr numara 165,91 ± 0,39 mg/100 gr Souza ve diğerleri, 2018 23
            olgun kabuk 619,98 ± 68,01 mg β-karoten/100 g 1109,62 ± 56,5 mg/100 gr 13348,97 ± 99,94 mg GAE/100 gr 472,80 ± 30,96 mg/100 gr 223,14 ± 6,89 mg C3G/100 gr Azevedo ve diğerleri, 2019 8
            tohumlar
            Liyofilize ve sulandırılmış 551 ± 31 mg/100 gr numara nd numara nd Grigio ve diğerleri, 2017 30
            Kurutulmuş tohumlar numara numara 385,63 ± 12,73 mg/100 gr 4.31 ± 0.02 mg/100 g 4.03 ± 0.02 mg/100 g Carmo et al., 201911
            Aqueous extract n.r. n.r. 2502 ± 46 mg GAE/100 g 16.12 ± 0.04 mg/100 g n.d Fidelis et al., 202013
            Ethanolic extract n.r. n.r. 1353 ± 19 mg GAE/100 g 16.12 ± 0.36 mg/100 g 3.51 ± 0.00 mg C3G/100 g Fidelis et al., 202013
            Pulp + Peel
            Lyophilized and reconstituted 4426 ± 90 mg/100 g n.r. 130.6 ± 2.9 mg/g n.r. 50.7 ± 1.5 μg/g Grigio et al., 201730
            Aqueous extract 197.22 ± 49.5 mg/100 g 1100.54 ± 18.7 mg/100 g 14 749.93 ± 5.51 mg GAE/100 g 425.44 ± 23.47 mg/100 g 209 ± 5.02 mg C3G/100 g Azevedo et al., 20198
            Peel + Seeds
            Dried n.r. 9.04 ± 0.95 g AA/100 g 672.49 ± 0.55 mg/100 g 76.49 ± 0.49 mg/100 g n.d. Fracassetti et al., 20135
            Fresh 5694.6 ± 2.9 μg/100 g 458.2 ± 9.2 mg AA/g 3738.0 ± 20.8 mg GAE/100 g n.r. 4.1 ± 0.3 mg eq. C3G/g de Azevedo ve diğerleri, 2014 32
            dondurularak kurutulmuş 1467,9 ± 1,6 μg/100 gr 11,8 ± 0,3 mg AA/g 2160,2 ± 54,4 mg GAE/100 gr numara 1,9 ± 0,1 mg eş. C3G/g de Azevedo ve diğerleri, 2014 32
            Taze 14,34 ± 0,72 mg eşdeğeri β-karoten/100 g numara 10011,06 ± 585,26 mg GAE/100 gr numara 21,10 ± 0,94 mg/100 gr da Costa Araújo ve diğerleri, 2022 19
            Ayrı bir pencerede aç
            bir tarih = algılanmadı. nr = bildirilmedi. AA = Askorbik Asit. AAE = Askorbik Asit Eşdeğeri. GAE = Gallik Asit Eşdeğeri. EAC = Ellagik Asit Eşleniği. CAE = Klorojenik Asit Eşdeğeri. C3G = Siyanidin-3-glukozit. C vitamini


            Kollajen üretimi, yara iyileşmesi, demir emilimi, enfeksiyona duyarlılığın azalması ve mukozal kanamanın önlenmesi gibi temel biyolojik aktiviteleri gerçekleştiren suda çözünür bir besindir. 17 Benzer şekilde, C vitamini biyoaktivitesi, hem askorbik asidin (AA) hem de oksidasyon ürünü olan dehidroaskorbik asidin (DHAA) etkisiyle belirlenir. 16 Açaí ( Euterpe oleracea ) (84,0 ± 10 mg AA/100 g), aserola ( Malpighia emarginata ) (1357 ± 9,5 mg AA/100 g), bacuri ( Platonia insigni ) (2,4 ± 0,3) gibi diğer Amazon meyveleriyle karşılaştırıldığında mg AA/100 g), murta ( Ugni molinae ) (181,0 ± 1,8 mg AA/100 g) veya jaboticaba ( Myrciaria jaboticaba) (238 ± 2,2 mg AA/100 g), 22 camu camu, C vitamininin ana doğal kaynaklarından biridir (1882 ± 43,2 mg/100 g). Camu camu küspesi, kabuğu ve tohumlarındaki bazı AA içeriği değerleri Tablo 1'de rapor edilmiştir . Camu camu tohumlarında AA içeriği bildirilmemiştir ve bazı araştırmalar camu camu kabuğunda posadan daha fazla AA içeriği bildirmiştir. 5

            C vitamini içeriği camu camu'nun olgunlaşma aşamasına bağlı olduğundan, birkaç çalışma olgunlaşma sürecinde C vitamini içeriğinin değiştiğini bildirmiştir. 6 , 21 Aslında, camu camu olgunlaşması sırasında 2004.66'dan 2605.76 mg/100 g meyve 6'ya ve yarı olgunluktan (5799 mg/100 g hamur) olgun aşamalara (6289 mg/100 g hamur) kadar bir askorbik asit artışı rapor edilmiştir. 21 Ayrıca, olgunlaşmamış camu camu çekirdeği çıkarılmış meyve ve olgunlaşmamış kabuktaki C vitamini içeriğinin analizi, olgun aşama ile önemli farklılıklar göstermiştir ( p ≤ 0.05). 23Diğer çalışmalar, Brezilya'daki genotiplere göre C vitamini içeriğini değerlendirdi. Bu nedenle, camu camu kabuğundaki yeşil (%90 ila %100 yeşil), yarı olgun (%10 ila %80 kırmızı) ve olgun (%80'in üzerinde kırmızı) aşamalardaki genotip 17, 38 ve 44 değerlendirildi. Genotip 44, olgun evrede en yüksek askorbik asit içeriğine sahipti; değeri Tablo 1'de gösterilmiştir . Yarı olgun (17,06 g/100 g) ve olgun aşamalar (24,02 g/100 g) da ölçülmüştür. Öte yandan genotip 17, aynı olgunluk dönemindeki farklı genotiplere kıyasla en yüksek askorbik asit içeriğine yeşil dönemde (17,79 g/100 g) sahipti. 23

            Diğer raporlar, ekstraksiyon yöntemlerinin ve kurutma tekniklerinin camu camu'daki C vitamini içeriği üzerindeki etkisini göstermiştir. İlk olarak, camu camu hamuru ve kabuğundaki C vitamini (AA + DHAA) içeriğini belirlemek için beş asit çözücü kullanıldı. 0,05 M sülfürik asit ile taşınan asit ekstraksiyonu, C vitamininin ekstraksiyon etkinliği en yüksek çözücü olduğunu kanıtlamıştır. Aynı çalışmada beş farklı orijin camu camu örneği arasından (Iguape, Sete Barras, Peru, Embrapa ve Brezilya-ticari), Peru camu camu posası (38,37 ± 2,13 g/100 g DW) ve Embrapa camu camu peel (13,56 ± 0,42 g/100 g DW) en yüksek AA içeriğini sundu. Aynı şekilde Embrapa camu camu kabuğu (2.16 ± 0.10 g/100 g DW) en yüksek DHAA içeriğini sunmuş, ancak herhangi bir camu camu hamurunda içerik belirlenmemiştir. 16İkincisi, camu camu nektarlarından (17 g camu camu posası, 17 g şeker ve 66 g maden suyu) C vitamini çıkarmak için termosonikasyon kullanıldı. Araştırma, 40 °C/30 dakikalık ekstraksiyon koşullarının en yüksek AA içeriğini (835,78 ± 1,8 mg/100 g) sunduğunu ve kontrol (termosonikasyon yok) ile önemli bir fark göstermediğini gösterdi (p ≤ 0,05 ) . Bununla birlikte, sıcaklık ve süre arttıkça, termal duyarlılığı nedeniyle AA içeriği azaldı ve bu nedenle AA kolayca bozunabilir. 24

            Kurutma koşullarının AA içeriği üzerindeki etkisi, liyofilizasyon ve püskürterek kurutma teknikleri kullanılarak değerlendirildi. Camu camu hamurundan (Manaus ve Sao Paulo) mikrokapsüller, üç farklı giriş sıcaklığında (120, 150 ve 180 °C) üç oranda (%6, %12 ve %18) taşıyıcı ajanlarla (maltodekstrin (MD)) elde edildi. ve Arap sakızı (AG)) püskürterek kurutma kullanılarak. Aynı şekilde camu camu hamuru da dondurularak kurutuldu. En yüksek AA değerleri 62,0 ± 0,7 mg AAE/g DW (%6 MD/180 °C), 137,5 ± 2,7 mg AAE/g DW (%6 MD/120 °C) ve 248,2 ± 1,2 mg AAE/g DW idi. (dondurularak kurutulmuş), kurutma sıcaklığı ve taşıyıcı madde (%) arttıkça AA içeriğinin azaldığı sonucuna varılmıştır. 25Öte yandan, camu camu mikrokapsülleri de taşıyıcı maddeler olarak maltodekstrin (MD), inülin (IN) ve oligo-fruktoz (OL) kullanılarak %20'de ve 150 °C'lik bir kurutma sıcaklığında üretildi ve 1124.17 ± AA içeriği elde edildi. Üç taşıyıcı ajan için sırasıyla 2,55, 935,13 ± 2,59 ve 872,84 ± 6,25 mg/mL. Yazarlar, AA içeriği kurutma sırasında daha az kayıp gösterdiğinden, MD'nin daha fazla kapsülleme kapasitesi sunduğu sonucuna varmışlardır. 14 Camu camu'daki yüksek C vitamini içeriği, gıda işleme sırasında sağlığı geliştiren maddelerin korunmasına yardımcı olan yeni teknolojilerin geliştirilmesini anlamlı kılar. Fenolik Bileşikler


            Bitkilerin oksidatif performansından, asitliğinden, tadından, kokusundan ve renginden sorumlu ikincil metabolitlerdir. 26 Bu bileşikler, abiyotik streslere ve patojenlere karşı düzenlemede yer alır ve sağlığı geliştirici farklı özelliklerden sorumludur. 1 Birkaç bitkiden elde edilen polifenoller, insan vücudunda analjezik, antikanser, antihipertansif ve antidiyabetik süreçlerde modülatörler olarak hareket etmiştir. 27 Benzer şekilde, polifenol tipi bir metabolit olan antosiyaninlerin koroner kalp hastalığı ve diyabet riskini azaltmada rol oynadığı ve obezite kontrolünde etkili olan antioksidan ve antikanser aktivitelere sahip olduğu gösterilmiştir. 27Camu camu posası, tohumları ve kabuğundaki toplam fenolik içerik, Tablo 1'de gösterildiği gibi çeşitli çalışmalarda tahmin edilmiştir . Rufino ve ark. 22 camu camu taze hamurunun (1176 ± 14,8 mg GAE/100 g) açai (454 ± 44,6 mg GAE/100 g), acerola (1063 ± 53,1 mg GAE/100 g) ile karşılaştırıldığında en yüksek toplam fenolik içerik değerini bildirmiştir. ve jaboticaba (440 ± 9.9 mg GAE/100 g). Ayrıca, 182.56 ± 1.76 mg/100 mL içeriği ile camu camu pulp and peel 2 , 5'te ana antosiyanin olarak siyanidin-3-glukozit (C3G) bildirilmiştir . 14

            Fracassetti ve ark. 5 mirisetin 3 -O- hekzosid, quercetin 3- O gibi camu camu kurutulmuş hamurda flavonoller (3,05 ± 0,07 mg/100 g) bildirmiştir.-hekzosid ve mirisetin; veskalagin ve kastalagin gibi ellagitanninler (16.10 ± 0.33 mg/100 g); ana fenolik bileşikler olarak ellagik asit (5.60 ± 0.11 mg/100 g) gibi ellagik asit türevleri (9.75 ± 0.10 mg/100 g). Fiziksel faktörler, olgunluk aşamalarına göre camu camu'daki polifenollerin içeriğini etkileyebilir; bu nedenle, olgunlaşma süreci ilerledikçe fenolik bileşik içeriği artar. Meyve gelişimi sırasında camu camu posasında antosiyanin içeriğinin 7,37'den 170,00 mg/100 g'a çıktığı rapor edilmiştir; ayrıca flavonol içeriğinin 38.96'dan 60.75 mg kuersetin/100 g'a yükseldiği ve diğer olgunluk dönemlerine kıyasla daha yüksek fenolik bileşik konsantrasyonu (12798.80 mg GAE/100g) olduğu bildirilmiştir. 6Coğrafi bölge fenolik bileşik içeriğini etkileyen diğer bir faktördür. Cunha-Santos ve ark. 28 Brezilya'nın farklı bölgelerinden camu camu'nun fenolik içeriğini inceledi ve maksimum kateşin (606.81 ± 37.68 mg/100 g DW), rutin (116.29 ± 16.43 mg/100 g DW), epikateşin (55.51 ± 7.82 mg/) değerleri buldu. 100 g DY), luteolin (29,83 ± 0,07 mg/100 g DY), quercetin (10,48 ± 0,91 mg/100 g DY) ve p- Belem'den gelenlerde kumarik asit (32.69 ± 0.91 mg/100 g DW), fenolik içerik değişiminin doğrudan hasat toprağı koşullarıyla bağlantılı olduğu sonucuna varır. Camu camu nektarlarının termosonikasyonu gibi bazı işleme faktörleri, toplam antosiyanin içeriğinin (C3G) 4,67 ± 0,2'den 3,92 ± 0,3 mg/100 g'a düştüğünü ve muhtemelen 60 saniye boyunca 85 °C'de en yüksek bozulmayı gösterdiğini ortaya çıkardı. antosiyaninlerin termal kararsızlığına. Buna karşılık, camu camu nektarlarının toplam flavonoid ve toplam fenolik içeriği termosonikasyon sırasında 9,75 ± 0,41'den 14,21 ± 0,5 mg/100 g'a (40 °C/2 dakikada) ve 829 ± 12'den 906 ± 1 mg GAE/'ye yükseldi. L (85 °C/60 sn), sırasıyla. 24

            Tohumlar ve kabuk gibi camu camu yan ürünlerinin, sağlığı teşvik eden ham maddeler olarak bir potansiyel öneren umut verici biyoaktif bileşikler içerdiğini belirtmekte fayda var. 13 , 19 , 29 , 30 Proantosiyaninler yalnızca camu camu tohumlarında bulundu (35.77 mg/100 g); 5 bu tür bileşikler insanlarda kansere karşı koruyucu rol göstermiştir. 31 Aynı şekilde polifenol ve antosiyanin içeriği, kabukta etli meyveye göre daha yüksekti. 6 , 8 Ayrıca, tohumlardaki toplam fenolik içerik, sırasıyla 3320.79 ± 229.06 ve 2475.81 ± 454.86 mg/100 g DW değerleri ile Peru, Tarapoto'dan elde edilen hamurdan daha yüksekti. 28Genotip çalışmaları, olgun camu camu kabuğundaki en yüksek fenolik bileşik ve antosiyanin değerlerinin, Embrapa'nın aktif germplazm bankasından (Brezilya) alınan genotip 17 ve 44'te bulunduğunu göstermiştir. 23 Daha önceki çalışmalar ayrıca şırınga asidi (7,0 ± 0,4 mg/100 g) ve flavonoidler quercetin (0,9 ± 0,1 mg/100 g), mirisetin (2,1 ± 0,5 mg/100 g) ve kateşin (12,4 ± 1,0) içeriğini bildirmiştir. mg/100 g) camu camu kabuğu ve tohumlarında. 32Başka bir rapor, özütleme çözücüleri olarak etanol, propanon ve su kullanılarak camu camu tohumlarından elde edilen toplam fenolik içeriği belirledi. Gerçekten de kullanılan solvent, polifenollerin içeriğini etkileyerek 40,00 ± 0,15 mg/100 g (sulu özüt), 44,92 ± 0,74 mg/100 g (etanollü özüt) ve 24,68 ± 0,11 mg/100 g (propanon özütü) değerleri verdi. . Yazarlar, gallik, kafeik, ferulik ve rosmarinik asit gibi fenolik asitler ve kuersetin, kateşin ve malvidin-3,5-diglucoside gibi flavonoidler gibi 16 bileşiğin fenolik profilini bildirdiler. 13 Bu bulgular, camu camu tohumlarında hiçbir antosiyanin, fenolik bileşik ve prosiyanidin A2 gibi proantosiyaninlerin belirlenmediği önceki sonuçlarla çelişmektedir. 5 , 13 , 30Trans -resveratrol, metilveskalagin ve 2,4-dihidroksibenzoik asit gibi fenolik bileşikler, in vitro antihemolitik aktivite ile istatistiksel bir korelasyon sergiledi ve bunların camu camu tohumlarındaki mevcudiyeti, bu yan ürün için potansiyel bir kullanım olduğunu gösteriyor. 33 Camu camu kabuklarında ve tohumlarında rapor edilen diğer bileşikler, n -heksan ile izole edilen ve %90 asetonitril ile karşı akım bölünmesiyle saflaştırılan ve karşı antimikrobiyal aktivite sergileyen rhodomyrtone, myrciarone A, myrciarone B ve isomyrtucommulone B gibi asilfloroglusinollerdir. Gram pozitif bakteriler. 34

            Camu camu meyvesinin güçlü asitliği ve acılığı, taze tüketimi için bir dezavantajdır; ancak içecekler, meyve suları, püreler, süt ürünleri ve reçeller gibi farklı işlenmiş ürünler, artan M. dubia hedonik kabulüne ve dolayısıyla besinsel ve sağlıklı değerine alternatif olarak geliştirilmiştir . 2 , 12 , 35 Örneğin camu camu kurabiyeleri, yan ürünler (tohumlar, kabuk ve artık posa) içerik olarak %5-20 oranında kullanılarak ve toplam fenolik içeriği arttırmak için 50, 60 ve 70 °C'de kurutularak üretildi. içerik. Polifenollerin tanımlanması, camu camu çerezlerinde aşağıdaki gibi 11 flavonoid varlığını göstermiştir: mirisetin 3- O gibi flavonoller-glikozit ve mirisetin-pentosit; luteolin 8- C -glikozit gibi flavonlar ; antosiyaninler, örneğin siyanidin 3-0- glukozit ve siyanidin malonil-diglukozit. Ayrıca, toplam fenolik bileşiklerin içeriği, yan ürünlerin heterojen bileşimine atfedilebilecek şekilde, kurutma sıcaklığıyla 23,9 ± 0,7 mg GAE/g'den (50 °C) 47,9 ± 1,1 mg GAE/g'ye (70 °C) yükseldi. veya dış meyve faktörlerinin etkisi. 36Mikrokapsüllenmiş camu camu'daki en yüksek fenolik bileşik içeriği, 43,8 ± 5,7 mg GAE/g DW (%6 MD/150 °C) ve 57,9 ± 2,9 mg GAE/g DW (%6 AG/120 °C) değerlerini gösterdi; aksine, taze camu camu 100.0 ± 7.2 mg GAE/g gibi daha yüksek değerler sergiledi ve liyofilize camu camu 97.1 ± 6.9 mg GAE/g DW değerleri gösterdi. Yazarlara göre, sıcaklık artışı ve taşıyıcı ajan (%) fenolik bileşik içeriğini %56'dan %75'e (MD) ve %38'den %65'e (AG) düşürmüştür. 25 Diğer camu camu mikrokapsülleri, 7,2–9,0 g antosiyanin/kg'lık taze ağırlıktan itibaren taşıyıcı madde olarak maltodekstrin (MD) kullanıldığında antosiyaninlerin daha yüksek tutulmasını gösterdi. 14Bu bağlamda, fenolik bileşikler, camu camu meyvesinin sağlığı geliştirici özellikleri üzerinde daha fazla etkiye sahip ikincil metabolitlerdir.

            Git: Sağlık Faydaları ile Camu Camu'nun Biyofonksiyonel Özellikleri


            İnsan sağlığının teşviki ile ilgili bazı biyofonksiyonel özellikler, yüksek biyoaktif bileşik içeriği nedeniyle bu Amazon meyvesine atfedilmiştir. Genel olarak, bu özellikler şu anda insanın günlük aktiviteleri üzerinde önemli bir etki sergileyen kardiyovasküler ve metabolik hastalıkların önlenmesi ve tedavisi ile bağlantılıdır. 1 , 2 , 9 , 10 , 27 , 35 , 37 Aşağıdaki bölümde bunlardan bazıları özetlenmiştir. Antioksidan Aktivite


            Camu camu'nun antioksidan aktivitesini değerlendirmek için başlıca üç farklı tek elektron transfer yöntemi kullanılmıştır: Tablo 2'de gözlemlendiği gibi DPPH, ABTS ve FRAP . Bu sonuçlar, maki ( Aristotelia chilensis ) (6,76 ± 0,25 mmol Trolox/100 g), papaya ( Carica papaya ) (4,41 ± 0,28 mmol Trolox/100 g) ve noni ( Morinda ) gibi diğer meyvelerle karşılaştırıldığında daha yüksek antioksidan aktivite değerleri göstermiştir. citrifolia ) (3,71 ± 0,17 mmol Trolox/100 g), DPPH yöntemi için 38 ve açaí ( Euterpe oleraceae ) (64,5 ± 19,2 μmol Trolox/g), acerola ( Malpighia emarginata ) (953 ± 34,1 μmol Trolox/g) , jaboticaba ( Eugenia jaboticaba) (317 ± 2,7 μmol Trolox/g) ve ABTS yöntemi için Jambolão ( Syzygium cumini ) (125 ± 10,8 μmol Trolox/g). 22 Veriler, camu camu'nun antioksidan aktivitesinin olgunlukla birlikte artma eğiliminde olduğunu ve olgun ve yarı olgun aşamalarda en yüksek değerleri gösterdiğini göstermiştir. 6 , 21 Genel olarak, bu aktivite, serbest radikalleri temizleyebildikleri ve geçiş metallerini azaltabildikleri için camu camu'nun C vitamini ve fenolik bileşiklerine atfedilmiştir. 9 , 10 , 12 , 36 İn vivo çalışmalar, camu camu'nun dondurulmuş hamur özlerinin tüketilmesinin, Tip 1 diyabetik sıçanlarda plazma antioksidan aktivitesini önemli ölçüde artırdığını gösterdi. 37Yakın tarihli in vivo raporlar, camu camu'daki biyoaktif bileşikler (fenolik bileşikler, karotenoidler ve C vitamini) arasında, sıçanlarda kanıtlandığı gibi gelecekteki antijenotoksik ve antimutajenik etkiler için reaktif oksijen türlerine (ROS) karşı bir süpürücü etki oluşturan sinerjistik bir etki gösterdi. 9 Tablo 2

            Camu Camu ( Myrciaria dubia ) ​​Meyve Parçaları için Bildirilen Antioksidan Aktivite a
            hamur
            taze olgun 5159,50 μmol Trolox eq./100 g numara numara Neves ve diğerleri, 2015 6
            Taze 1,32 ± 0,09 mmol Troloks/g 1,23 ± 0,03 mmol Troloks/g numara Fujita ve diğerleri, 2015 9
            dondurularak kurutulmuş 1,28 ± 0,09 mmol Troloks/g 1,16 ± 0,11 mmol Troloks/g numara Fujita ve diğerleri, 2015 9
            Liyofilize ve sulandırılmış 8,46 ± 0 mg/g 11,7 ± 0,3 mg/g numara Grigio ve diğerleri, 2017 30
            Nektar 1360 ± 6 μmol Troloks numara numara Amaral Souza ve diğerleri, 2019 24
            Olgun taze hamur 1,93 μmol TEAC/g 2,167 μmol demir sülfat/g numara Grigio ve diğerleri, 2021 21
            Soymak
            taze olgun 5848,90 μmol Trolox eq./100 g numara numara Neves ve diğerleri, 2015 6
            Liyofilize ve sulandırılmış 8,53 ± 0 mg/g 11,7 ± 0 mg/g numara Grigio ve diğerleri, 2017 30
            olgun cilt 1328,50 ± 14,40 μmol Trolox eşdeğeri/g numara 1370,64 ± 30,36 μmol Trolox eşdeğeri/g Azevedo ve diğerleri, 2019 8
            tohumlar
            aseton özü 8,75 ± 0,05 μmol eşdeğeri Trolox/g casuarinin numara 7,47 ± 0,02 μmol eşdeğeri Trolox/g casuarinin Kaneshima ve diğerleri, 2016 41
            Liyofilize ve sulandırılmış 8,4 ± 0,2 mg/g 2,45 ± 0 mg/g numara Grigio ve diğerleri, 2017 30
            %50:50 sulu:etanolik ekstrakt numara 8076 ± 511 mg AAE/100 gr 4340 ± 117 mg AAE/100 gr Carmo ve diğerleri, 2019 11
            sulu özü 1963 ± 11 mg AAE/100 gr numara numara Fidelis ve diğerleri, 2020 13
            etanolik özü 1190 ± 84 mg AAE/100 gr numara numara Fidelis ve diğerleri, 2020 13
            propanon 1336 ± 50 mg AAE/100 gr numara numara Fidelis ve diğerleri, 2020 13
            Hamur + Kabuk
            Taze 167 ± 11 μmol TE/g numara numara Chirinos ve diğerleri, 2010 39
            Liyofilize ve sulandırılmış 11,7 ± 0,2 mg/g 8,53 ± 0 mg/g numara Grigio ve diğerleri, 2017 30
            Olgun çekirdeksiz meyve 1520,45 ± 112,79 μmol Trolox eşdeğeri/g numara 1418,25 ± 17,65 μmol Trolox eşdeğeri/g Azevedo ve diğerleri, 2019 8
            Soyma + Tohumlar
            Taze 166,6 ± 1,1 μmol TE/g numara numara de Azevedo ve diğerleri, 2014 32
            dondurularak kurutulmuş 32,4 ± 1,6 μmol TE/g numara numara de Azevedo ve diğerleri, 2014 32
            50 °C'de kurutulmuş çerezlerdeki yan ürünler 5,3 ± 0,2 mg/mL (EC50) 8,8 ± 0,6 μmol TE/g numara das Chagas ve diğerleri, 2021 36
            Ayrı bir pencerede aç
            bir tarih = algılanmadı. nr = bildirilmedi. TE = Troloks Eşdeğeri. TEAC = Trolox Eşdeğeri Antioksidan Kapasitesi. AAE = Askorbik Asit Eşdeğeri.
            Önceki istatistiksel analize göre, DPPH testi altında Peru'dan gelen camu camu meyvesinin antioksidan aktivitesi, askorbik asit (r2 = 0.190) ile karşılaştırıldığında fenolik bileşik içeriği (r2 = 0.931) ile en yüksek korelasyonu sergiledi . 39 Diğer çalışmalar, fenolik bileşikler ( r 2 = 0.991) ve askorbik asit ( r 2 = 0.979) ile yüksek bir korelasyon göstermiştir. 6Ayrıca, olgunlaşma sırasında, muhtemelen camu camu'nun antioksidan kapasitesini etkileyen flavan-3-ol ve ellagik asit türevlerinin içeriği artmıştır. Yazarlar, kimyasal yapılarında hidroksil grupları bulunan fenolik bileşiklerin, serbest radikallere elektron ve hidrojen atomları bağışlayabileceği sonucuna vardılar. 39 Camu camu nektarlarında, termosonikasyon, termal işleme bağlı olarak DPPH tahlili altında antioksidan aktiviteyi azaltır ve ultrasonik işleme sırasında, su solvolizi üretilir, bu da C vitamini ve polifenollerin bozulmasına ve ayrıca hidroksil radikallerinin üretilmesine neden olarak biyoaktif maddeyi indükler. bileşik oksidasyon. 24Teff nişasta filmlerinde Camu camu hamuru uygulandı. Nihai filmdeki %2.0'lik bir camu camu ekstraktı konsantrasyonu, DPPH (%100.00 ± 0.00) ve ABTS'ye (%89.19 ± 0.42) karşı radikal temizleme aktiviteleri gösterdi. 40 Bu, olası bir sinerjistik etkinin camu camu ve diğer gıda matrislerinden kaynaklanabileceği, böylece antioksidan aktivitesini artırabileceği ve dolayısıyla önceki raporlarla uyumlu olarak uygulama sayısını artırabileceği anlamına gelir. 39

            Ek olarak, camu kamu hamuru mikrokapsülleri, 0,29 ± 0,01 mmol Trolox/g (%6 MD, 120 °C) ve 0,77 ± 0,03 mmol Trolox/g (%6 AG, 120 °C) ile karşılaştırıldığında daha yüksek bir DPPH süpürme kapasitesi sergilemiştir. 0,78 ± 0,02 mmol Trolox/g (%6 MD, 120 °C) ve 0,49 ± 0,03 mmol Trolox/g (%6 AG, 120 °C) FRAC süpürme kapasitesi, daha yüksek polifenol içeriğiyle uyumludur. Bununla birlikte, kurutma işlemi sırasındaki ısıl işlem nedeniyle bazı fenolik bileşikler bozunmaya maruz kaldı ve bu da taze kağıt hamuruna kıyasla %42 ila %73 arasında değişen DPPH/FRAP süpürme kapasitesi kayıplarına neden oldu. 25 Bu etkiden kaçınmak için, camu camu hamuru mikrokapsüllerinin antioksidan aktivitesi bir soya sütü içeceğinde değerlendirildi. 72 saatlik fermantasyondan sonra, antioksidan aktivite DPPH inhibisyonuna bağlı olarak yaklaşık %90 arttı. 35Başka bir çalışmada, taşıyıcı ajan olarak maltodekstrin (MD) ile elde edilen camu camu mikrokapsülleri en yüksek DPPH antioksidan aktivite değerini (%92,72) göstermiş, bunu oligo-fruktoz (%85,32) ve inülin (%82,43) örnekleri izlemiştir. Kurutma sırasında askorbik asit veya fenolik bileşiklerin parçalanma olasılığı olmasına rağmen, mikroenkapsülasyon işlemi bu meyvenin ana biyoaktif bileşiklerinin korunmasına ve tutulmasına yardımcı olabilir. 14

            Camu camu yan ürünlerinin (kabuk ve tohumlar) DPPH süpürme aktivitesi de değerlendirildi. Sonuçlar, camu camu örneklerinin antioksidan kapasitesi ile askorbik asit ( r 2 = 0.999), toplam fenolik bileşikler ( r 2 = 0.955), antosiyaninler ( r 2 = 0.905), karotenoidler ( r 2 = 0.905), karotenoidler ( r2 = 0.994) ve proantosiyaninler ( r2 = 0.786 ). 38Benzer şekilde, camu camu kabuğu ve tohumları, camu camu hamuru, 510,5 ± 156,1 μmol Trolox/100 g ve 167,5'ten daha yüksek DPPH süpürücü aktivite (1036,4 ± 211,2 μmol Trolox/100 g) ve FRAP (752,3 ± 41,0 μmol Trolox/100 g) değerleri sergiledi. ± 54,4 μmol Trolox/100 g, sırasıyla. 5 Bu sonuçlar, her numunedeki biyoaktif bileşiklerin miktarına bağlanabilir.

            Camu camu tohumlarında, etanol ve propanon ekstraktlarına kıyasla su ekstraktı için daha yüksek bir değer (2838 mg AAE/100 g) sergileyen DPPH radikaline karşı süpürme aktivitesi mekanizması da değerlendirildi. Ayrıca, toplam fenolik içerik ( r = 0.8992), toplam flavonoid içeriği ( r = 0.9156) ve yoğunlaştırılmış tanen içeriği ( r = 0.8975) için yüksek öneme sahip ( p ≤ 0.05) süpürme aktivitesi ile biyoaktif bileşikler arasında pozitif bir korelasyon kurulmuştur . 13 Camu camu tohumlarının sulu, etanolik ve karışık özlerinin (%25:75, %50:50 ve %75:25) antioksidan aktiviteleri de değerlendirildi ve %50:50 ile en yüksek DDPH ve FRAP değerleri bulundu. sulu:etanolik ekstrakt gösterildiği gibiTablo 2 . Daha önce bahsedildiği gibi, camu camu'nun antioksidan aktivitesi, biyoaktif bileşik miktarı ile doğası gereği bağlantılıdır. Bu nedenle, yazarlar, camu camu tohum ekstraktlarında ( p ≤ 0.05) DPPH ( r = 0.9504) ve FRAP ( r = 0.9730) değerleri ile önemli bir pozitif korelasyon sunduğundan, bu biyoaktiviteden metilveskalajinin sorumlu olduğunu belirlediler . 33 Ek olarak, camu camu tohumlarından ve kabuk aseton ekstraktlarından izole edilen altı tanen (casuarinin, castalagin, grandinin, metilvescalagin, stachyurin ve vescalagin) yüksek bir antioksidan kapasite sergilemiştir ( Tablo 2) .). Camu camu özleri yoğurda dahil edildikten sonra bile, antioksidan kapasite yüksek değerler gösterdi, bu nedenle süt matriksi camu camu antioksidan aktivitesini potansiyelize edebilir. Ayrıca , grandinin , vescalagin, castalagin, methylveskalagin, stachyurin ve casuarinin gibi camu camu tohumlarından elde edilen C -glikozidik ellagitanninler de izole edildi ve saflaştırıldı ve DPPH ve ABTS antioksidan aktiviteleri ölçüldü, bu da C -glikosidik ellagitanninlerin sergilendiğini gösterir gallik asit ve askorbik asitten daha güçlü antioksidan aktiviteye sahiptir. 41

            Antioksidan aktivite ayrıca ORAC (oksijen radikal absorbans kapasitesi) metodolojisi ile ölçüldü ve camu camu ile güçlendirilmiş kağıt hamuru için 337.1 ± 77.9 μmol Trolox/100 g değerleri elde edildi. 5 Benzer şekilde ORAC aktivitesi, camu camu olgunluk aşamalarıyla arttı ve esas olarak askorbik aside atfedilen, camu camu hamuru için 5036.5 μmol Trolox eq./100g ve camu camu kabuğu için 5810.0 μmol Trolox eq./100g maksimum değerleri elde etti ( r2 = 0.967 ) ) ve toplam fenolik bileşikler ( r2 = 0.983) . 6 Camu camu tohumlarında, ORAC değeri 28,838 ± 1620 mg CE/100 g ((+)-catequin eşdeğerleri) olup, sıçanın beyin lipid peroksidasyonunu %10-65 oranında inhibe etmeye yetmiştir. 13Son olarak, %10 camu camu ekstraktı içeren çerez uygulamasında, bildirilen maksimum ORAC aktivitesi 25,38 ± 1,21 μmol TE/g idi; yine de yazarlar, numunelerde bir kurutma işlemi ve heterojenlik olmasına rağmen, biyoaktif bileşiklerin varlığı nedeniyle gıda ürününde ORAC aktivitesinin kaldığını bildirdiler. 14 Bu nedenle, camu camu meyvesindeki yüksek antioksidan aktivite değerlerinden C vitamini ve ellagitanninler ve flavonoidler gibi fenolik bileşikler sorumludur. Antihiperglisemik Aktivite


            Hiperglisemi, kandaki yüksek seviyelerde postprandiyal glikozdan kaynaklanır. Genellikle bu hastalık, diyabet gibi yaygın, iyi bilinen metabolik sendrom hastalıklarının bir sonucudur. 41 Uluslararası Diyabet Federasyonu'na göre, 2045 yılına kadar diyabet vakası olan nüfusun 700 milyonu aşacağı ve 42'sinin önde gelen yedinci ölüm nedeni olduğu tahmin edilmektedir. Tip 2 diyabet salgını, genetik ve genetik olmayan faktörlerin bir sonucudur. Sağlıksız sedanter yaşam tarzları ve kronik oksijen arızası yoluyla metabolik bozulmaya neden olan ve aynı zamanda metabolik sendromu tetikleyen rafine karbonhidratlar ve yağlarla kaplı diyetlerden kaynaklanan aşırı beslenme ile bağlantılı olabilir. 32 , 43Diyetteki karbonhidratlar genellikle kimyasal yapısı α-(1,4) bağları ve amilopektin bağları ile karakterize edilen polisakkaritleri ve ayrıca α-(1,4) ve α-(1,6) bağları olan dallı glukanları içerir. İnsan vücudundaki emilim amaçları için, karbonhidratlar, tükürük enzimleri tarafından katalizle başlayan ve ardından bağırsak enzimleri tarafından hidroliz ile başlayan gıda gastrointestinal sindirimi sırasında hidrolize edilir. Pankreas a-amilaz (pankreas tarafından üretilir), ince bağırsağın başlangıcında karbonhidratlar üzerinde etki ederek onları a-(1,4) ve a-(1,6) bağlarında hidrolize ederek reaksiyon ürünleri olarak oligosakkaritler ve disakkaritler üretir. maltoz, maltotrioz ve dekstrinler olarak. 44Daha sonra, a-glukosidaz (ince bağırsakta bulunur), absorbe edilemeyen a-amilaz hidroliz ürünleri üzerinde etki ederek onları glikoz, fruktoz ve galaktoz gibi monosakkaritlere ayırır. 45 , 46 Sonuç olarak, bu enzimlere karşı inhibisyon, yemek sonrası kan şekeri seviyelerinin düşürülmesine yardımcı olur. 32 , 43 Bağırsak enzimleri tarafından katabolize edilen hidrolizasyon şekilde gösterilmiştir.Figür​Şekil 22.
            Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı: ao2c07245_0002.jpg
            şekil 2
            Pankreatik α-amilaz ve α-glukosidaz enzimlerinin etkisiyle polisakkaritlerin ve oligosakkaritlerin hidroliz aşamaları.

            Akarboz gibi bazı tıbbi ilaçlar, bu ilişkili glikoz metabolizması enzimlerinin etkisini inhibe eder ve sonuç olarak şu anda hiperglisemi ve diyabet Tip 1 hastalarının teşhisinde kullanılmaktadır.43 ,45 İn vivo antidiyabetik aktivite , diyabetik balb/c fareleri kullanılarak kanıtlanmıştır. 100, 500 ve 1000 mg/kg dozlarda damıtılmış suda (5:50 w/v) seyreltilmiş liyofilize camu camu posası. Sonuçlar, tüm dozların plazma glikoz seviyelerini düşürdüğü sonucuna varılmasına izin verdi; bu nedenle camu camu posası antidiyabetik bir kapasite sergilemiştir. 47Benzer şekilde, 40 dislipidemik sıçan, 14 gün boyunca üç doz camu camu suyu (0.4, 4.0 ve 10 mL/kg) tüketmiştir. Nihai sonuçlar, camu camu suyunun potansiyel hipolipidemik etkisini kanıtlayan plazmatik lipoproteinler, triasilgliserol ve toplam kolesterolde bir düşüş gösterdi. 48 Çözünür tanenler ve flavan-3-oller gibi bazı fenolik bileşiklerin a-amilaz inhibitörleri olduğu ve antosiyaninler ve flavonollerin a-glukosidaz inhibitörleri olduğu bildirilmiştir. 45 Daha sonra (−)-3- O -galloylepicatechin, (−)-3- O -galloylcatechin, proanthocyanidins [(−)-epigallocatechin, (−)-epigallocatechin-3- O -gallate, (−)- gibi bileşikler) epikateşin, (+)-kateşin, (-)-epikateşin-3- O-gallate], naringenin, kaempferol, luteolin glikozit ve apigenin a-amilaz inhibisyon aktivitesi gösterirken, ellagic asit, kafeik asit, ferulik asit, (+)-catechin/(-)-epicatechin, pelargonidin-3-rutinoside ve siyanidin-diglukozit, farklı bitki materyallerinde a-glukosidaz inhibisyon kapasitesi göstermiştir. 49

            Camu camu'daki yüksek fenolik bileşik konsantrasyonu, kandaki glikozun ikinci etkilerine karşı koyan antihiperglisemik aktivite göstermiştir. 9 Cambuci ( Campomanesia phaea (O. Berg.)) (IC 50 = 1,24 ± 0,02 μg CE/mL), jaboticaba ( Eugenia jaboticaba ) gibi Myrtaceae familyasından diğer meyvelerde pankreatik a-amilaz inhibisyon değerleri bildirilmiştir. ) (IC 50 = 7,28 ± 0,02 μg CE/mL), 50 cagaita ( Eugenia dysenterica DC) (IC 50 = 3,8 mg numune DW/mL) ve araçá ( Psidium guineensis Sw ) (IC 50 = 5,9 mg numune DW) /mL). 51Ayrıca, cambuci ( Campomanesia phaea (O. Berg.)) (IC50 = 2.0 ± 0.3 μg CE/mL), cagaita (IC50 = 1.4 ± 0.2 μg CE/mL), 50 araçá ( Psidium Cattleianum Sabine) (IC 50 = 25,4 ± 0,7 μg/mL), pitanga ( Eugenia uniflora L.) (IC 50 = 66,3 ± 2,4 μg/mL), 52 ve jaboticaba ( Eugenia jaboticaba ) (IC 50 = 14,30) ± 4,2 μg GAE/mL reaksiyon). 53

            Dondurularak kurutulmuş camu kamu hamurunda, a-amilaz enzimi için in vitro inhibe edici aktivite , Amazon numunesi için IC50 = 359 ± 105 μg/mL ve Sao için IC50 = 299 ± 152 μg/mL reaksiyon olarak rapor edilmiştir. Paulo örneği ve α-glukosidaz inhibisyon değerleri Amazon örneği için IC50 = 5,57 ± 1,05 μg/mL ve Sao Paulo örneği için IC50 = 2,98 ± 1,12 μg/mL reaksiyon olarak bildirildi . 9 Aynı şekilde casuarictin ( r = 0,969), ellagik asit ( r = 0,965) ve şırınga asidi ( r = 0,965) arasında yüksek bir korelasyon= 0.818) ile Amazon örneğinin α-amilaz inhibitör aktivite değerleri bulunmuştur. Dondurularak kurutulmuş numuneler, akarbozdan (3,05 ± 0,25 μg/mL) daha düşük α-amilaz inhibisyon değerleri sergiledi, ancak Sao Paulo'dan alınan numuneler, Amazon meyvesinden daha yüksek inhibitör aktivite gösterdi. Bildirilen değerler, fenolik bileşiklerin stabilitesini etkileyen sıcaklık gibi kurutma koşullarının sonucu olabilir. 9 Tersine, her iki numune de akarbozdan daha yüksek a-glukosidaz inhibe edici aktivite gösterdi (152 ± 47 μg/mL reaksiyon). Öte yandan, kurutulmuş camu camu tohumu ekstresi, a-amilaz'ı %85 ila %95 ve a-glukosidaz'ı %82 ila %99 oranında inhibe ederek antihiperglisemik aktivite sergiledi. Camu camu tohumlarının ferulik asit ( r) gibi fenolik bileşikleri ile yüksek bir istatistiksel korelasyon bulunmuştur.= 0.988), p -kumarik asit ( r = 0.935) ve ellagik asit ( r = 0.934). Enzimatik aktivitenin bir modülatörü olarak, camu camu tohumlarının ekstraktının, tip 2 diyabetin erken evrelerini yönetmek için farklı gıda matrislerine dahil edilmesi önerildi. 13

            Berraklaştırılmış Brezilya camu camu meyve suyunda, pankreatik a-amilaza (IC 50 = 4.65 ± 0.05 ve 0.56 ± 0.0 μg) karşı in vitro inhibitör aktiviteleri ölçmek için poliamid ve C 18 kartuşları ile katı faz ekstraksiyonu (SPE) kullanılarak bir polifenol ekstraksiyonu yapıldı. CE/mL) ve a-glukosidaz (IC50 = 6.7 ± 0.0 ve 2.7 ± 0.0 μg CE/mL). Aynı çalışmada camu camu suyunun postprandial glisemi üzerindeki etkisi de değerlendirilmiştir. 1 haftalık bir karbonhidrat yemeği tükettikten sonra, 23 sağlıklı denek 50 g beyaz ekmek ve 300 mL camu camu suyu tüketti ve kontrol olarak sudan daha düşük serum glikoz seviyeleri elde etti. Bu sonuçlar, camu camu ve türev ürünlerinin,in vitro ve in vivo seviyelerin yanı sıra hiperglisemi komplikasyonlarının yönetimi. 50 Ayrıca, mikrokapsüllenmiş camu camu , Amazon numunesi için en yüksek IC50 = 5,13 ± 3,39 μg/mL (%6 MD/150 °C) ve IC50 = 2,98 ± 1,12 değerleri ile a-glukosidaza karşı akarbozdan daha fazla engelleme kapasitesi sergiledi . Sao Paulo örneği için μg/mL (%6 MD, 120 °C). 9Beklendiği gibi, dondurularak kurutulmuş numuneler, püskürtülerek kurutulmuş numunelerden daha iyi inhibitör değerler göstermiştir. Aslında hiçbir camu camu örneği, a-amilaza karşı akarbozdan daha fazla engelleme kapasitesi göstermedi. Aynı yazarlar, antihiperglisemik aktivite üzerindeki etkiyi değerlendirmek için soya sütü ile fermente edilmiş bir içeceğe camu camu tozlarının (dondurularak kurutulmuş ve püskürtülerek kurutulmuş; 0, 24, 48 ve 72 saat boyunca %0,5 ila 1 camu camu tozu) eklenmesini değerlendirdiler. laktik asit bakterilerinin etkisiyle. 30Dondurularak kurutulmuş numunelerin, püskürtülerek kurutulmuş numunelerden daha yüksek enzim inhibisyon aktivitesi gösterdiğini ve 24 ve 48 saatlik fermantasyondan sonra en yüksek a-amilaz enzim inhibitörünü ve 48 ve 72 saat sonra (yaklaşık %90) a-glukosidaz inhibe edici aktiviteyi sergilediğini bulmuşlardır. . Sonuç olarak, soya sütündeki daha yüksek camu camu toz konsantrasyonları, α-amilaz ve α-glukosidaz inhibitör aktivitelerini önemli ölçüde arttırdı.

            Bu sonuçlar önceki çalışmalarla aynı fikirdedir32, camu camu taze ve kurutulmuş özütünün inhibitör aktivitelerin değerlerinden dolayı doğal bir antidiyabetik kaynak olarak kabul edilebileceğini öne sürmektedir. Bu çalışma, sıcak kurutulmuş (50 ve 80 °C) ve dondurularak kurutulmuş camu camu kalıntısının antienzimatik aktivitesini değerlendirdi. Kurutma koşulları nedeniyle, liyofilize ekstrakt her iki enzim, a-amilaz (yaklaşık %60) ve a-glukosidaz (yaklaşık %99) için yüksek oranda inhibisyon gösterdi. Bununla birlikte, numunelerdeki inhibisyon değerleri ile toplam fenolik içerik arasında net bir ilişki yoktu. Bu nedenle, a-amilaz ve a-glukosidaz inhibitör aktivitelerinin sorumlu bileşiklerini belirlemek için daha fazla araştırma gereklidir. Antihipertansif Aktivite


            Hipertansiyon, böbrek hasarı ve kalp krizi gibi yan etkilere neden olan kardiyovasküler hastalıklar (CVD'ler) için önemli risk faktörlerinden biridir. Dünya çapında 1 milyar insanın muzdarip olduğu bu hastalık, vücutta tansiyon yükselmesi olarak tanımlanıyor. 54Ek olarak, COVID-19 salgını sırasında en kritik komorbiditelerden biriydi. Böbrek düşük kan basıncı seviyeleri tespit ettiğinde, anjiyotensinojeni (hormon) bir dekapeptit olan anjiyotensin-I'e dönüştürmekten sorumlu olan renin (proteaz) salgılar. Anjiyotensinojen karaciğer tarafından üretilir ancak metabolik etkisini gerçekleştirmek için kan dolaşımına salınır. Akciğerlerde anjiyotensin-I, böbrekler tarafından salınan ACE-I (anjiyotensin-dönüştürücü enzim-I) enziminin aktivitesi ile anjiyotensin-II'ye (bir oktapeptit) dönüştürülür. Anjiyotensin-II, hücrelerde anjiyotensin reseptörleri AT1R ve AT2R olarak bilinen iki farklı tip reseptöre bağlanır ve etkileştiği hücreye (böbrek hücreleri veya arterler) bağlı olarak vazokonstriktör etki, sempatik aktivite, sekresyon oluşturarak kan basıncını yükseltir. aldosteron, ve sodyumun geri emilimi. Ayrıca ACE-I, güçlü bir antihipertansif peptit olan bradikinin'i etkisiz hale getirerek kan basıncının yükselmesine katkıda bulunur.55 Bu metabolik yol,Figür​Figür 33.
            Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı: ao2c07245_0003.jpg
            Figür 3
            Anjiyotensin dönüştürücü enzim (ACE-I) inhibitörlerinin mekanizması.

            Hipertansiyon tedavisinde kullanılan en yaygın ilaçlar arasında, ACE-I'i inhibe ederek yüksek kan basıncını düzenleyen kaptopril, lisinopril veya enalapril bulunmaktadır. Bitkilerde bulunan bazı fenolik bileşiklerin ve flavonoidlerin doğrudan ACE-I inhibe edici aktiviteye sahip olduğu, hipertansiyon geliştirme riskini azalttığı ve kan basıncını normalleştirdiği bildirilmektedir53,55 örneğin, tanik asit, benzoik asit, p -hidroksibenzoik asit, protokatekuik diğerleri arasında asit, gallik asit, vanilik asit, şırınga asidi, katekol ve pirogallol. 54 Camu camu'daki fenolik bileşik profiline rağmen, birkaç antihipertansif çalışma geliştirilmiştir. Ayrıca, hiçbir in vitroSao Paulo ve Brezilya Amazon bölgesinden gelen camu camu hamuru ve ürünleri için ACE-I inhibitör aktivitesi bulundu. 9 Camu camu'da kersetin, ellagik asit ve klorojenik asit tespit edilmesine rağmen, ACE-I inhibitörü veya antihipertansif ile ilgili aktivite bildirilmemiştir. Bununla birlikte, in vivo veriler, jelatin kapsüller kullanılarak 20 katılımcıya uygulanan kurutulmuş camu camu pericarp ekstrelerinin kan basıncı seviyelerini düşürdüğünü ve arter çapını etkilediğini göstermiştir. 56

            Fermente soya sütü numunelerinde kurutulmuş camu camu posası tozlarının birleştirilmesi, yüksek ACE-I inhibe edici aktivite (yaklaşık %90) sergiledi; 34 Benzer şekilde, camu camu'nun kurutulmuş tohumlarından elde edilen sulu, etanolik ve propanon özleri, %28 ila %40 arasında ACE-I inhibisyonu sergiledi. Camu camu tohum kabuğu ekstraktlarının ACE-I'i inhibe etme potansiyeli de değerlendirildi ve bazı fenolik bileşikler ile ACE-I inhibisyon kapasitesi arasında şu şekilde pozitif bir korelasyon bulundu: kuersetin ( r = 0.852), p-kumarik asit ( r = 0.935 ) ), rosmarinik asit ( r = 0,881), rutin ( r = 0,841), ellagik asit ( r= 0.934) ve kafeik asit ( r = 0.925), ACE-I inhibisyonundan sorumlu olduğu bildirilen bileşikler. Ellagic asit ve quercetin'in yüksek korelasyon değeri, daha önce bildirilen sonuçlarla çelişmektedir. 9 Bu nedenle, camu camu antihipertansif aktiviteden sorumlu bileşikleri karakterize etmek için daha konsantre ekstraktlarla daha fazla analiz yapılması önerilir. Antiobezite Aktivitesi


            Obezite, metabolik sendromun başlıca nedenlerinden ve kronik inflamatuar etiyolojinin komplikasyonlarından biridir. Özellikle abdominal obezite, artan kardiyovasküler hastalık riski ile doğrudan bağlantılı olan insülin direnci, yüksek tansiyon, disglisemi, visseral adipozite ve dislipidemi gibi karmaşık metabolik bozukluklarla ilişkili bir hastalıktır. 10 Obezite ve fazla kilo prevalansı dünya çapında son derece yüksektir ve endişe verici tahminler, 2030 yılına kadar 1 milyardan fazla insanın obez olacağını göstermektedir.57Tedavi yollarından biri, günlük enerji alımını sağlayan ve kişiyi düzenli fiziksel aktivitelerde ustalaştıran sağlıklı ve dengeli bir diyet benimsemektir. Camu camu kullanımı, bu hastalığın önlenmesinde ve tedavisinde giderek daha yakındır. Preklinik modeller sırasında fareler veya sıçanlar ile in vivo olarak birçok antiobezite çalışması yapılmıştır ve bu, camu camu'nun biyofonksiyonel özelliklerinde daha fazla araştırma için kesin bir aşamaya yol açmıştır. 58 , 37

            Brezilya camu camu posası ile veya bu posası olmadan sürekli egzersizin etkisi diyete bağlı obezite sıçan modelinde incelenmiştir. 58 , 59 Sıçanların yemek sonrası kolesterol (HDL ve LDL), trigliseritler, glikoz, vücut ağırlığı, yem alımı ve iç organ ve epididimal yağ düzeylerini değişken olarak kullandılar ve camu camu alımı ile fiziksel egzersiz arasında bir ilişki olduğu sonucuna vardılar. sıçanlarda vücut ağırlığını ve dışkı, kalp ve karaciğerdeki visseral ve epididimal yağ birikintilerinin ve inflamatuar proteinlerin değerlerini azaltmak için. Buna ek olarak, egzersiz grubu kolesterol ve LDL seviyelerini düşürürken, yazarlar bu deneyi ümit verici bularak glikoz, trigliserit ve HDL düzeylerinde yeterli sonuçlar elde ettiler. 58

            Diğer yazarlar, yüksek yağ veya yüksek sukroz diyetiyle beslenen farelerde obezite ve ilişkili immünometabolik bozuklukların tedavisinde bağırsak mikrobiyotası ile camu camu tüketimi arasında bir ilişki bulmuşlardır. İlgili sonuçlar, camu camu'nun ham ekstraktının kilo alımını önlediğini, yağ birikimini azalttığını ve metabolik inflamasyonu ve endotoksemiyi körelttiğini gösterdi. Tedavi edilen fareler, glikoz toleransını ve insülin duyarlılığını iyileştirdi ve ayrıca hepatik yağlanmaya karşı tamamen korundu. Bu nedenle yazarlar, camu camu'nun kahverengi adipoz doku aktivasyonu ve bağırsak mikrobiyotasına bağlı bir mekanizma olan ve zar safra asidi havuzu boyutu ve bileşimindeki önemli değişikliklerle bağlantılı bir mekanizma olan artan enerji harcaması yoluyla visseral ve karaciğer yağ birikimini önlediği sonucuna vardılar. 57 Başka bir in vivoobez fareler ile yapılan bir çalışma, posasından elde edilen camu camu suyunun, 12 hafta boyunca günde 25 mL posa suyu alan farelerin plazmasındaki glukozu, kolesterolü, trigliseritleri ve insülini azaltabildiğini gösterdi. 37Camu camu suyunun yutulması, sigara içen bireylerde enflamatuar ve oksidatif belirteçleri ve sağlıklı bireylerde açlık glikozu, toplam kolesterol ve LDL kolesterol seviyelerini azaltmıştır. Quercetin, quercetin glikozitler, mirisetin, rutin, ellagik asit, ellagitanninler ve proantosiyanidinler, camu camu sularında bulunan antiobezite kapasitesinin sorumlu bileşikleri olarak kabul edilmiştir. Gösterilen bazı etkiler, vücut ağırlığı artışı, dislipidemi, hepatik steatoz, fekal kolesterol atılımı, adipozite, açlık hiperglisemisi, hiperinsülinemi, oksidatif stres ve doymuş lipidlerde azalma olmuştur. 1 , 37

            Son araştırmalar, %20 askorbik asit (200 mg/kg/gün CCE) içeren en yüksek camu camu özü dozunun , diyete bağlı obez farelerde (altı saat aç) vücut ağırlığı artışını (p < 0.05) önemli ölçüde azalttığını göstermiştir . 5 haftalık tedaviden sonra oral uygulama. Ayrıca, daha düşük deri altı yağ dokusu, insülin direnci indeksi, trigliseritler ve kolesterol içeriği kanıtlandı. Düşük CCE dozu (62.5 mg/kg/gün) yalnızca HDL olmayan kolesterolü azaltmıştır. Bununla birlikte, önceki verilere göre, her iki CCE dozu da bağırsak mikrobiyotasında bir modülasyon sergileyerek hiperglisemiyi azalttı ve glukoz toleransını iyileştirdi. 10Son olarak, 58 obez katılımcıda camu camu tüketiminin etkisi metabolik sendrom göstergelerine göre değerlendirildi. Katılımcılar (20-59 yaş arası) eşit gruplara ayrıldı: kontrol (plasebo) ve deneysel (442 mg C vitamini ile liyofilize camu camu). Deney sonunda deney grubunda kontrol grubuna göre kan basıncında, trigliseritlerde, karın çevresinde azalma ve HDL değerlerinde artış elde edildi. Yazarlar, fiziksel aktivite uygulamasının katılımcıların kilo vermesine de katkıda bulunduğunu belirterek, sağlıklı günlük alışkanlıkların biyoaktif bileşik açısından zengin bir diyete eşlik etmesi gerektiği sonucuna vardı. Bu bağlamda, M. dubiave biyoaktif bileşikleri, in vivo analizde kolesterolü, trigliseritleri ve ağırlık seviyelerini düşüren bir anti-obezite kapasitesi gösterdi. 60 Diğer Sağlıkla Bağlantılı ve Toksisite Biyoaktiviteleri


            Camu camu'nun biyofonksiyonel özelliklerine ilişkin bir rapor ve analiz sunduktan sonra, tip 2 diyabet ve kardiyovasküler hastalıklar gibi metabolik sendromlarla ilgili hastalıkların önlenmesi veya tedavisi için Myrciaria dubia meyvesinin kullanımına özel olarak odaklanılmıştır . Bu İncelemenin son bölümünde, başka bazı biyolojik ve farmakolojik aktiviteler bulundu. Camu camu meyvesine atfedilen antialerjenik, nöroprotektif, antiproliferatif, antihemolitik ve antiinflamatuar aktiviteler rapor edilmiş ve M. dubia posası, kabuğu ve tohumlarındaki ana bulguların bir parçası olarak Tablo 3'te özetlenmiştir. Tablo 3

            Camu Camu Meyvesinin Vivo ve in Vitro Biyoaktiviteleri Sağlıkla Bağlantılı ve Toksisite
            antialerjik etki kurutulmuş camu camu meyvesi 50 μg/mL'de %1 formik asit içeren %70 etanol camu camu özü, RBL-2H3 hücrelerinde A23187 kaynaklı alerjiler nedeniyle histamin salınımında ve mast hücre degranülasyonunda azalma gösterdi. Etki, histidin dekarboksilaz (HDC) ekspresyonunda bir azalmaya ve dolayısıyla histamin salınımında bir azalmaya yol açan H1 ve H4 histamin reseptörlerinin modülasyonu yoluyla elde edildi. Do ve diğerleri, 2022 61
            Laboratuvar ortamında
            Antitümör Aktivitesi meyve tozu Farelerin mikrobiyal bileşimindeki varyasyon ( n = 10/grup), camu camu'nun (polifenol açısından zengin) oral takviyesiyle antitümör aktivite ve daha güçlü bir anti-PD-1 tepkisi gösterdi. Benzer şekilde, immüno-terapötik tepkilerin gösterilmesi ( Ruminococcaceae ve Alistipes'in büyümesini teşvik ederek ), tümör mikroçevresi içinde CD8+/FOXP3+CD4+ oranını iyileştirdi. Camu camu'da bulunan bir ellagitannin olan Castalagin, bu etkilerden sorumlu bileşik olarak tanımlandı. Messaoudene ve diğerleri, 2022 62
            In vivo/In vitro Bir ön insan denemesinde, antiretroviral tedavi alan saptanamayan viral yüke sahip iki HIV hastasına 4 gün boyunca 1 g camu camu kapsülleri verildi. Denemenin sonunda, fekal metagenomik analiz kullanılarak, immünostimülatör bağırsak bakterisi R. bromii'nin büyümesinde bir ilerleme gözlemlendi.
            Deri hastalıklarında oksidatif stres ve antiinflamatuar etki kurutulmuş camu camu meyvesi Kurutulmuş camu camu meyvesinden 10 μg/mL'de elde edilen %70 etanol artı %1 formik asit özütü, yüksek glikoz kaynaklı insan keratinositleri cilt hasarı modelinde oksidatif strese ve iltihaplanmaya karşı koruyucu bir etki gösterdi. Önerilen anti-inflamatuar mekanizma, farklı sinyal yolları (NF-κB/AP-1, MAPK ve NFAT) yoluyla sitokinlerin ve kemokinlerin üretimindeki bir düzenlemeydi. Ek olarak, aynı konsantrasyondaki camu camu özü, antioksidan enzim NAD(P)H:kinon oksidoredüktaz 1 (NQO1) seviyesinin artmasına yol açan transkripsiyon faktörü Nrf2'nin aktivasyonunu destekledi. Do ve diğerleri, 2021 63
            Laboratuvar ortamında
            Analjezik ve Antiödemojenik Kağıt hamuru ve kabuğu Damıtılmış suyla %10, %25 ve % 50'deki meyve suları, %50'de meyve suyu kullanılan 12 saatlik karanlık/12 saatlik ışık döngüleri sırasında yetişkin erkek farelerin ( n = 128) spontan hareketlerinde hiçbir değişiklik göstermedi. Oral antinosiseptif etki, formalin, sıcak plaka ve eksiksiz Freund adjuvan testleri ile kanıtlanmıştır. Camu camu suyu, pençe ödeminde antiödemojenik aktivite sergiledi. da Silva ve diğerleri, 2021 64
            in vivo
            Antiproliferatif ve hepatotoksik Kabuk, hamur ve tohum etanolik ekstraktlar Dört insan tümör hücre dizisi değerlendirildi. Sadece camu camu kabuğu, apigenin ve mirisetin türevlerinin içeriğine bağlı olarak hücrelere karşı inhibitör etkiler göstermiştir. Ekstreler, karaciğer birincil kültürü PLP2'ye (400 μg/mL) karşı toksisite göstermedi ve bu, camu camu'nun gıda sistemlerinde güvenli kullanımlarını desteklediğini doğruladı. Conceição ve diğerleri, 2020 2
            Laboratuvar ortamında
            Antimalarial ve antischistosomicidal etkiler tohumlar Farklı oranlarda su ve etanol (%100 su, %100 etil alkol, %50 su + %50 etil alkol, %25 su + %75 etil alkol ve %75 su + %25 etil) ile hazırlanmış beş camu camu tohumu özütü alkol) Plasmodium falciparum , Schistosoma mansoni ve Leishmania amazonensis'e karşı değerlendirildi . %50 su + %50 etil alkol, %75 su + %25 etil alkol ve %100 su ekstraktları, sıtma ve şistozomiyaz parazitlerine karşı en yüksek büyüme önleyici aktiviteyi göstermiştir. Hemolitik ve antileishmanial aktivite gözlenmedi. Fenolik bileşikler, özellikle metilveskalagin ve 2,4-dihidroksibenzoik asit, ekstraktların sunduğu aktivitelerle ilişkilendirilmiştir. Carmo ve diğerleri yapmak, 2020 33
            Laboratuvar ortamında
            Antiproliferatif, antihemolitik, antiinflamatuar Tohum özleri İki tümör hücre dizisi ve hücre içi reaktif oksijen türleri (ROS), çoğalmayı önleyici etkiler yoluyla değerlendirildi. Tohum ekstraktı, daha yüksek dozlarda antiproliferatif aktivite göstermiştir. Antihemolitik aktivite, insan eritrositlerine göre izotonik ve hipotonik koşullarda değerlendirildi ve daha yüksek tohum özü dozlarında doza bağımlı oldu. Son olarak, tohum ekstraktı, 100, 300 ve 1000 μg/mL konsantrasyonlarda hücreler için toksikti, anti-enflamatuar bir aktivite gösterdi ve LPS ile uyarılan makrofajlarda TNF-a sitokin salınımını azalttı. Fidelis ve diğerleri, 2020 13
            Laboratuvar ortamında
            nefroprotektif etki alkollü özü Camu camu'nun alkollü ekstraktının nefroprotektif etkisi, gentamisin kaynaklı nefrotoksisite sıçan modelinde üç farklı dozda (800, 1000 ve 1200 mg/kg) değerlendirildi. 8 gün boyunca sağlanan camu camu alkollü özü, histopatolojik analizde düşük zararlı etkiler gösterdi. Ayrıca, gentamisin ile tedavi edilen grupla karşılaştırıldığında camu camu grubunda kreatinin düzeylerinde azalma ve böbrek ağırlığında artış gözlemlendi. Becerra ve diğerleri, 2019 65
            in vivo
            Antigenotoksik ve antimutajenik Bütün meyve suları (%25 ve %50 ve + 5 g/kg Etanol ile hazırlanmıştır) 7 gruba ayrılan İsviçreli erkek fareler ( n = 56), 28 günlük bir tedavi ile kullanıldı. Negatif kontrol olarak distile su kullanıldı. Karaciğer ve böbrek dokularında, etanol numuneleri 28. güne kadar antijenotoksik olmak üzere genotoksikti. Kemik iliğinde sitotoksik etki saptanmamıştır. Etanol ilaveli numuneler, antimutajenik aktivite gösterdi ve veriler, fenolik bileşiklerin içeriği ile ilişkilendirildi. da Silva ve diğerleri, 2019 66
            in vivo
            immünolojik yanıt meyve tozu Bağışıklık parametrelerini değerlendirmek için oral camu camu uygulamasıyla (0, 50, 100, 250 ve 500 mg/kg) Nil tilapialı 5 haftalık bir model geliştirildi; solunum aktivitesi, lizozim aktivitesi, serum bakterisit aktivitesi, doğrudan aglütinasyon ve melanomakrofaj merkez sayısı ( p < 0.05). Bağırsak, böbrek, dalak ve solungaçlarda histopatolojik lezyon gözlenmedi. Yunis-Aguinaga ve diğerleri, 2016 67
            in vivo
            Hücresel gençleştirme Dondurularak kurutulmuş kağıt hamuru ve püskürterek kurutma ürünleri A 10-day model was developed with planarian animals to evaluate for cellular protection and rejuvenation. Compared to the control, camu camu extracts showed rapid regeneration and regrowth. Only freeze-dried camu camu showed superior regrowth in the tail of the animals. Arabic gum and phenolic compounds in the extract may stimulate regeneration. Fujita et al., 20159
            In vivo
            Suppression of d-galactosamine (GalN)-induced liver injury Lyophilized fruit juice concentrate The lyophilized camu camu fruit (powder) added to the diet (10%) (7 days) displayed an hepatoprotective effect in rats, suppressing the liver injury induced by the action of d-galactosamine. The active principle was isolated and identified as 1-methylmalate. This compound, at 250, 500, and 1000 mg/kg of body weight, suppressed the increased levels of bilirubin and the activity of ALT, AST, and LDH enzymes induced by GalN. Akachi et al., 201068
            In vivo
            Antimicrobial activity Pulp, seeds, skin, leaves, bark, and skin + seed combined Antimicrobial activity of camu camu extracts obtained from different organs has been established. Reports of growth inhibition against Gram positive (L. monocytogenes, S. aureus), Gram negative (E. coli, S. typhimurium, S. enteritidis, P. aeruginosa), yeasts (Candida albicans and Saccharomyces cerevisiae), and pathogenic protozoa (Leishmania spp. and Plasmodium spp.) are described. Some phenolic compounds (i.e., acylphloroglucinols, flavonoids, ellagitannins, C6C1Camu camu'da bulunan fenolik asitler ve kalkonlar) antimikrobiyal aktivite göstermiştir, ancak etki mekanizması aydınlatılmayı beklemektedir. Barrios Renteria ve diğerleri, 2022 69 ve buradaki referanslar
            Laboratuvar ortamında
            Kabuklar, küspe, tohumlar ve yapraklar Oral patojenlere karşı on bir antimikrobiyal aktivite raporu yayınlanmıştır. Farklı camu camu organlarından elde edilen ekstraktlar farklı metodolojilerle değerlendirilmiştir. Aktivite esas olarak Gram pozitif ağız boşluğu florasına ( S. aureus , S. mutans ve S. sanguinis ) ve bir mayaya ( C. albicans ) karşı gözlenmiştir . Pardo-Aldave ve diğerleri, 2019 70 ve buradaki referanslar
            Ayrı bir pencerede aç
            Git: Sonuçlar ve Görünüm


            Myrtaceae familyasının bir parçası olan camu camu ( Myciaria dubia ) meyvesi, farklı biyoaktif bileşiklerin yüksek içeriği nedeniyle birçok sağlık yararına sahip umut verici bir başlangıç ​​​​materyalidir. Bu Gözden Geçirme, camu camu'dan (tohumlar, kabuklar ve küspe) biyobileşenlerin sağlığı geliştiren gıda bileşenleri olarak rolünün değerlendirilmesiyle ilgili yayınları özetlemekte ve M. dubia'nın şu sonuca varmaktadır:doğadaki ikinci doğal C vitamini kaynağıdır ve polifenol çeşitliliği metabolik sendromlu hastalıkların önlenmesi ile ilişkilendirilebilir. Bununla birlikte, bu etkilerle ilgili biyolojik öneme sahip yeni moleküllerin, ekstraksiyonu ve gelecekteki gıda uygulamaları sırasında oksidasyon ve bozunma süreçlerinden kaçınılarak hala açıklanması gerekmektedir. bazı moleküllerin, örneğin d -galaktozamin (GalN) kaynaklı karaciğer hasarının baskılanmasıyla ilişkili 1-metilmalat ve tümörün ilerlemesinde azalma ile birlikte Castalagin gibi belirli aktivitelerden sorumlu olduğu tespit edilmiştir . Muhtemelen, bu meyvede daha fazla biyoaktif bileşik bulunmaktadır; bu nedenle ek in vitro ve in vivoilgili biyoaktif bileşikleri belirlemek, yeni hedefleri belirlemek veya insan vücudundaki fizyolojik mekanizmalarını deşifre etmek için çalışmalara ihtiyaç vardır, bu da bu umut verici meyvenin uygulama sayısını artırmaya olanak tanır. Bildiğimiz kadarıyla, hipertansiyon ve diyabeti önlemek için camu camu ile klinik deneyler geliştirilmektedir, dolayısıyla beklenen sonuçlar camu camu'nun insan sağlığına yararlı etkilerinin anlaşılmasını sağlayacaktır. M. dubia antioksidan aktivitesine ve hiperglisemi, hipertansiyon ve obezite riskini azaltan olumlu etkilerine rağmen , sağlıklı yaşam tarzlarının ve besin bazlı beslenmenin de bulaşıcı olmayan hastalıkların önlenmesi ve tedavisi için gerekli tamamlayıcılar olduğunu belirtmekte fayda var.

            Eskiden yerli halk, gribi önlemek için sağlık amacıyla camu camu tüketiyordu. 38Son yıllarda, Amazon bölgesinin biyoekonomisi, Amazon biyomunu oluşturan yedi ülke arasında ulusal bir endişe kaynağı olmuştur. Bu nedenle, uluslararası işbirliği programları camu camu meyvesi gibi en önemli türlerden bazılarını bünyesinde barındırır. Amaç, sürdürülebilir üretim yoluyla yerel çiftçilerin istihdamını ve ekonomik geliri desteklemek, yerli topluluklarla çalışmak, yasadışı madencilik ve iklim kriziyle mücadele etmek ve karbon ayak izini azaltmak, gıda endüstrisinde bilimsel bir çalışma ve uygulamaya yol açmaktır. Aynı şekilde bu uygulama, nutrasötik amaçlar için doğal bir bileşen ve katma değeri yüksek fonksiyonel bir katkı maddesi olarak dahil edildiğinden sağlıklı bir alternatif olarak değerlendirilebilir. Ek olarak, camu camu, püskürtülerek kurutulmuş mikrokapsüller olarak çok sayıda teknolojik kullanım olanağına sahiptir. fonksiyonel gıdaların ticari kullanım için çeşitli gıda matrislerine (içecekler, şekerlemeler ve diğerleri arasında süt ve unlu mamuller) dönüştürülmesine olanak tanır. Sonuç olarak, fizikokimyasal, biyoaktif ve teknolojik çalışmalarM. dubia, gıda ve farmakoloji endüstrisindeki gelecekteki uygulamaları göz önünde bulundurularak bu meyvenin yeni araştırma yaklaşımlarına dahil edildiğini kabul etmektedir.

            Git: teşekkürler


            JMG-C. Hibe için Programa de Becas de Excelencia Doktora del Bicentenario–Corte-I için, Colombia Tecnología e Innovación of Colombia'ya (Minciencias) Ambassadorio de Ciencia'ya teşekkürler.

            Git: notlar


            Bu çalışma, Fondo Nacional de Financiamiento para la Ciencia, la Tecnología y la Innovación, Francisco José de Caldas (sözleşme No. 0459–2013) ve Red Nacional para la Bioprospección de Frutas Tropicales-RIFRUTBIO'dan alınan hibelerle desteklenmiştir.

            Git: notlar


            Yazarlar rakip bir finansal çıkar beyan etmemektedir.

            Git: Referanslar
            • Donado-Pestana CM; Moura MHC; de Araujo RL; de Lima Santiago G.; de Moraes Barros İK; Brezilya yerli Myrtaceae meyvelerinden Genovese MI Polifenolleri ve bunların obeziteye ve bununla ilişkili komplikasyonlara karşı potansiyel sağlık yararları . Curr. görüş. Yiyecek. bilim 2018, 19 , 42–49. 10.1016/j.cofs.2018.01.001. [ CrossRef ] [ Google Akademik ]
            • Conceição N.; Albuquerque BR; Pereira C.; Correa RCG; Lopes CB; Calhelha RC; Alves MJ; Barros L.; Ferreira ICFR Camu-camu'nun [ Myrciaria dubia (Kunth) McVaugh] biyoaktif yüksek katma değerli gıda bileşenlerinin umut verici kaynakları olarak yan ürünleri: Yoğurtların işlevselleştirilmesi . moleküller. 2020, 25 , 70. 10.3390/moleküller25010070. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Campelo PH; Alves Filho EG; Silva LM; de Brito ES; Rodrigues S.; Fernandes FAN Terpenler ve seskiterpenler açısından zengin bir meyve suyunda dielektrik bariyer deşarj plazma teknolojisi kullanılarak aroma ve aroma modülasyonu . LWT - Yiyecek. bilim Teknoloji 2020, 130 , 109644. 10.1016/j.lwt.2020.109644. [ CrossRef ] [ Google Akademik ]
            • Akter MS; O S.; Eun J.-B.; Ahmed M. Camu-camu ( Myrciaria dubia ) meyvesinin besin bileşimleri ve sağlığı geliştiren fitokimyasalları: Bir gözden geçirme . Yiyecek. Res. Int. 2011, 44 , 1728–1732. 10.1016/j.foodres.2011.03.045. [ CrossRef ] [ Google Akademik ]
            • Fracasetti D.; Costa C.; Moulay L.; Tomás-Barberán FA Camu-camu meyvesinden ( Myrciaria dubia ) elde edilen iki toz ürünün ellagik asit türevleri, ellagitanninler, proantosiyanidinler ve diğer fenolikler, C vitamini ve antioksidan kapasitesi . Yiyecek. kimya 2013, 139 , 578–588. 10.1016/j.foodchem.2013.01.121. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Neves LC; Silva VX d.; Pontis JA; Flaş A.; Roberto SR Hasat öncesi camu-camu [ Myrciaria dubia (HBK) Mc Vaugh] meyvelerinde biyoaktif bileşikler ve antioksidan aktivite . bilim Hortik. 2015, 186 , 223–229. 10.1016/j.scienta.2015.02.031. [ CrossRef ] [ Google Akademik ]
            • de Araujo FF; Neri-Numa IA; de Paulo Farias D.; da Cunha GRMC; Pastore GM Eugenia cinsinin (Myrtaceae) yabani Brezilya türü, gıda ve farmakolojik amaçlar için bir inovasyon sıcak noktası olarak . Yiyecek. Res. Int. 2019, 121 , 57–72. 10.1016/j.foodres.2019.03.018. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Azevedo L.; de Araujo Ribeiro PF; de Carvalho Oliveira JA; Correia MG; Ramos FM; de Oliveira EB; Barros F.; Ticari yetiştiricilikten elde edilen Stringheta PC Camu-camu ( Myrciaria dubia ), doğal yetiştiriciliğe (Amazon Ormanı) göre daha yüksek seviyelerde biyoaktif bileşikler içerir ve in vivo olarak antimutajenik etkiler gösterir . J. Sci. Gıda Tarım. 2019, 99 , 624–631. 10.1002/jsfa.9224. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Fujita A.; Sarkar D.; Wu S.; Kennelly E; Shetty K.; Genovese MI Antihiperglisemi, antihipertansiyon, antimikrobiyal özellikler ve hücresel gençleştirme için camu-camu'nun ( Myrciaria dubia McVaugh) fenolik bağlı biyoaktif maddelerinin değerlendirilmesi . Gıda Res. Int. 2015, 77 , 194–203. 10.1016/j.foodres.2015.07.009. [ CrossRef ] [ Google Akademik ]
            • A. hakkında; Brochot A.; Pomié N.; Wemelle E.; Druart C.; Regnier M.; Delzenne NM; Vos WM; Knauf C.; Cani PD Camu-camu obeziteyi azaltır ve obez ve diyabetik farelerin diyabetik profillerini iyileştirir: Bir doz aralığı çalışması . Metabolitler 2022, 12 , 301. 10.3390/metabo12040301. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Carmo MAVD; Fidelis M.; Presete CG; Marques MJ; Castro-Gamero AM; Myoda T.; Granato D.; Azevedo L. Hydroalkolik Myrciaria dubia (camu-camu) tohum özleri, kromozom hasarını önler ve antioksidan ve sitotoksik ajanlar olarak işlev görür . Gıda Res. Int. 2019, 125 , 108551. 10.1016/j.foodres.2019.108551. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Santos IL; Miranda LCF; da Cruz Rodrigues AM; da Silva LHM; Amante ER Camu-camu [ Myrciaria dubia (HBK) McVaugh]: Hammaddenin bütünleşik değerlemesi için ürünlerin özelliklerinin ve önerilerinin gözden geçirilmesi . Gıda Kimyası 2022, 372 , 131290. 10.1016/j.foodchem.2021.131290. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Fidelis M.; Araújo Vieira do Carmo M.; da CruzTM; Azevedo L.; Myoda T.; Miranda Furtado M.; Boscacci Marques M.; Sant'Ana AŞ; Ceneviz MI; Young Oh W.; Wen M.; Shahidi F.; Zhangh L.; Françin M.; de Alencar SM; Rosalen PL; Granato D. Camu-camu tohumu ( Myrciaria dubia ) ​​– Yan akıştan bir antioksidan, antihiperglisemik, antiproliferatif, antimikrobiyal, antihemolitik, antiinflamatuar ve antihipertansif bileşene . Gıda Kimyası 2020, 310 , 125909. 10.1016/j.foodchem.2019.125909. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • de Abreu Figueiredo J.; Andrade Teixeira M.; Henrique Campelo P.; Teixeira Lago AM; Pereira de Souza T.; Yoshida MI; Rodrigues de Oliveira C.; Pereira APA; Papaz GM; Sanches EA; Alvarenga Botrel D.; Vilela Borges S. Camu-camu özlerinin prebiyotik biyopolimerler kullanılarak kapsüllenmesi: biyoaktif bileşiklerin kontrollü salınımı ve bunların fizikokimyasal ve termal özellikleri üzerindeki etkisi . Gıda Res. Int. 2020, 137 , 109563. 10.1016/j.foodres.2020.109563. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Meléndez-Martínez AJ; Mandic AI; Bantis F.; Böhm V.; Borge GİA; Brnčić M.; Bysted A.; Kano Milletvekili; Dias MG; Elgersma A.; Fikselová M.; Garcia-Alonso J.; Giuffrida D.; Gonçalves VSS; Hornero-Méndez D.; Kılıç K.; Lavelli V.; Manganaris GA; Mapelli-Brahm P.; Marunek M.; Olmedilla-Alonso B.; Periago-Castón MJ; Pintea A.; Sheehan JJ; Tumbas Şaponjac V.; Valšíková-Frey M.; Meulebroek LV; O'Brien N. Gıdalar ve yemlerdeki karotenoidler üzerine kapsamlı bir inceleme: statüko , uygulamalar, patentler ve araştırma ihtiyaçları . kritik Rev. Gıda Bilimi Nutr. 2022, 62 , 1999–2049. 10.1080/10408398.2020.1867959. [ PubMed ] [ CrossRef ] [ Google Scholar]
            • Cunha-Santos ECM; Vigano J.; Neves DA; Martínez J.; Camu-camu'da Godoy HT C Vitamini [ Myrciaria dubia ( HBK) McVaugh]: ekstraksiyon ve analitik yöntemlerin değerlendirilmesi . Gıda Res. Int. 2019, 115 , 160–166. 10.1016/j.foodres.2018.08.031. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Dosedel M.; Jirkovský E.; Macáková K.; Krčmová LK; Javorska L.; Pourova J.; Mercolini L.; Remião F.; Nováková L.; Mladěnka P. C Vitamini—Kaynaklar, fizyolojik rol, kinetik, eksiklik, kullanım, toksisite ve belirleme . Besinler. 2021, 13 , 615. 10.3390/nu13020615. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • López-Fernández O.; Dominguez R.; Pateiro M.; Munekata PES; Rocchetti G.; Lorenzo JM Sıvı kromatografi–tandem kütle spektrometri tekniği (LC–MS/MS) kullanılarak polifenollerin belirlenmesi: Bir İnceleme . antioksidanlar. 2020, 9 , 479. 10.3390/antiox9060479. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • da Costa Araújo PA; dos Santos Garcia VA; Osiro D.; de Souza França D.; Van FM; de Carvalho RA Kuru camu-camu'nun endüstriyel kalıntılarından elde edilen aktif bileşikler . Gıda Bilimi Teknoloji 2022, 42 , e0532 10.1590/fst.05321. [ CrossRef ] [ Google Akademik ]
            • Zanatta CF; Mercadante AZ Brezilya tropikal meyvesi camu-camu'dan ( Myrciaria dubia ) karotenoid bileşimi . Gıda Kimyası 2007, 101 , 1526–1532. 10.1016/j.foodchem.2006.04.004. [ CrossRef ] [ Google Akademik ]
            • Grigio ML; de Moura EA; Alves Chagas E.; Berlingieri Durigan MF; Cardoso Chagas P.; Ferreira de Carvalho G.; Zanchetta JJ Hasat sonrası depolama sırasında farklı olgunlaşma aşamalarında toplanan kamucamu meyvelerindeki biyoaktif bileşikler ve antioksidan aktivitesi . Açta Sci. Agron. 2021, 43 , e50997. 10.4025/actasciagron.v43i1.50997. [ CrossRef ] [ Google Akademik ]
            • Rufino MSM; Alves RE; de Brito ES; Pérez-Jiménez J.; Saura-Calixto F.; Mancini-Filho J. Brezilya'dan geleneksel olmayan 18 tropikal meyvenin biyoaktif bileşikleri ve antioksidan kapasiteleri . Gıda Kimyası 2010, 121 , 996–1002. 10.1016/j.foodchem.2010.01.037. [ CrossRef ] [ Google Akademik ]
            • Souza A.; Oliveira T.; Mattietto R.; Nascimento W.; Lopes A. Embrapa'nın aktif germplazm bankasından camu-camu genotiplerinin kabuğundaki biyoaktif bileşikler . Gıda Bilimi Technol, Campinas. 2018, 38 , 67–71. 10.1590/1678-457x.33716. [ CrossRef ] [ Google Akademik ]
            • Amaral Souza F. d. C.; Gomes Sanders Moura L.; de Oliveira Bezerra K.; Paiva Lopes Aguiar J.; Moreira Mar J.; Sanches EA; Faccini dos Santos F.; Fırın AM; Nicolau Paulino B.; Camu-camu nektarlarının işlenmesinde uygulanan Campelo PH Termosonikasyon: Biyoaktif bileşikler ve kalite parametreleri üzerindeki etkisi . Gıda ve Biopro Proc. 2019, 116 , 212–218. 10.1016/j.fbp.2019.06.003. [ CrossRef ] [ Google Akademik ]
            • Fujita A.; Souza VB; Daza LD; Fávaro-Trindade CS; Granato D.; Genovese MI Sprey kurutma parametrelerinin camu-camu'nun (Myrciaria dubia Mc. Vaugh) in vitro fonksiyonel özellikleri üzerindeki etkileri : Tipik bir Amazon meyvesi . J. Gıda Bilimi 2017, 82 , 1083–1091. 10.1111/1750-3841.13668. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Erukainure OL; Sanni O.; Islam S.. Clerodendrum volubile : fenolikler ve sağlığa uygulamaları . Polifenollerde : İnsan Sağlığı ve Hastalığında Etki Mekanizmaları , 2. baskı ; Academic Press, Elsevier Inc., 2018; s 53–68. [ Google Akademik ]
            • Gomes Ortak Başkan Yardımcısı; Rigolon TCB; Souza MS d. S.; Alvarez-Leite JI; Lucia CMD'si; Martino HSD; Rosa C. d. OB Antosiyaninlerin mitokondriyal biyogenez, iltihaplanma ve oksidatif stres üzerindeki antiobezite etkileri: Sistematik bir inceleme . Beslenme. 2019, 66 , 192–202. 10.1016/j.nut.2019.05.005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Cunha-Santos ECE; Rodrigues-Silva C.; Ferreira Ferreira da Silveira T.; Teixeira Godoy H. Farklı coğrafi bölgelerden camu-camu meyvesinin farklı kısımlarının fenolik bileşikler ekstraksiyonunun optimizasyonu . Bitki Besinleri Hum. Nutr. 2022, 77 , 340–344. 10.1007/s11130-022-00985-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lima SR; Azevedo de Carvalho AP; Brezilya Amazon gıda atıklarından Conte-Junior CA Sağlık: Biyoaktif bileşikler, antioksidanlar, antimikrobiyaller ve kansere ve ağız hastalıklarına karşı potansiyeller . kritik Gıda. bilim Nutr. 2022, 25 , 1–23. 10.1080/10408398.2022.2101983. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Grigio ML; Chagas EA; Rathinasabapathi B.; Cardoso Chagas P.; Vieria da Silva AR; Moreira Sobral ST; Rodrigues de Oliveira R. Camu-camu ( Myrciaria dubia ) meyvesinin farklı kısımlarında bulunan niteliksel değerlendirme ve biyobileşikler . Afr. J. Gıda Bilimi 2017, 11 , 124–129. 10.5897/AJFS2016.1574. [ CrossRef ] [ Google Akademik ]
            • Lee Y. Procyanidin'in kanser kemopreventif potansiyeli . Toksikol Res. 2017, 33 , 273–282. 10.5487/TR.2017.33.4.273. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • de Azevedo JCS; Fujita A.; de Oliveira EL; Ceneviz MI; Correia RTP Kurutulmuş camu-camu (Myrciaria dubia HBK McVaugh) endüstriyel kalıntı: İşlevsel özelliklere sahip, biyoaktif açıdan zengin bir Amazon tozu . Gıda Res. Int. 2014, 62 , 934–940. 10.1016/j.foodres.2014.05.018. [ CrossRef ] [ Google Akademik ]
            • Carmo MAV'ı yapın; Fidelis M.; Sanchez CA; Castro AP; Kamplar I.; Kolombo FA; Marques MJ; Myoda T.; Granato D.; Azevedo L. Camu-camu (Myrciaria dubia) ümit verici antimalarial ve antischistosomicidal özelliklere sahip yeni bir biyoaktif bileşik kaynağı olarak tohumlar . Gıda Res. Int. 2020, 136 , 109334. 10.1016/j.foodres.2020.109334. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kaneshima T.; Myoda T.; Toeda K.; Fujimori T.; Nishizawa M. Camu-camu ( Myrciaria dubia ) kabuğu ve tohumlarının antimikrobiyal bileşenleri . Biyosci. Biyoteknoloji biyokimya 2017, 81 ( 8 ), 1461–1465. 10.1080/09168451.2017.1320517. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Fujita A.; Sarkar D.; Ceneviz MI; Shetty K. Laktik asit bakteriyel fermantasyonu kullanılarak camu-camu'nun (Myrciaria dubia Mc. Vaugh ) anti-hiperglisemik ve anti-hipertansif özelliklerinin iyileştirilmesi . Proses Biyokimyası 2017, 59 , 133–140. 10.1016/j.procbio.2017.05.017. [ CrossRef ] [ Google Akademik ]
            • das Chagas EGL; Van FM; dos Santos Garcia VA; Yoshida CMP; de Carvalho RA Camu-camu (Myrciaria dubia) yan ürünleri tozları ile üretilen kurabiyelerde antioksidan bileşiklerinin zenginleştirilmesi . LWT – Gıda Bilimi Teknoloji 2021, 137 , 110472. 10.1016/j.lwt.2020.110472. [ CrossRef ] [ Google Akademik ]
            • de Souza Schmidt Gonçalves AE; Lellis-Santos C.; Curi R.; Lajolo FM; Genovese MI Camu-camu'nun (Myrciaria dubia McVaugh) donmuş hamur özleri, Tip 1 diyabetik sıçanların hiperlipidemisini ve lipid peroksidasyonunu hafifletir . Gıda Res. Int. 2014, 64 , 1–8. 10.1016/j.foodres.2014.05.074. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Girones-Vilaplana A.; Baenas N.; Villaño D.; Speisky H.; García-Viguera C.; Moreno DA Biyolojik etkilere sahip fitokimyasallar açısından zengin Latin Amerika meyvelerinin değerlendirilmesi . J. İşlev. yiyecekler. 2014, 7 , 599–608. 10.1016/j.jff.2013.12.025. [ CrossRef ] [ Google Akademik ]
            • Chirinos R.; Galarza J.; Betalleluz-Pallardel I.; Pedreschi R.; Campos D. Peru camu camu (Myrciaria dubia (HBK) McVaugh) meyvesinin farklı olgunluk aşamalarında antioksidan bileşikleri ve antioksidan kapasitesi . Gıda Kimyası 2010, 120 , 1019–1024. 10.1016/j.foodchem.2009.11.041. [ CrossRef ] [ Google Akademik ]
            • Ju A.; Song KB Bir antioksidan ambalaj malzemesi olarak camu-camu ( Myrciaria dubia Mc. Vaugh) özü içeren teff nişasta filmlerinin geliştirilmesi . End. Bitkileri Prod. 2019, 141 , 111737. 10.1016/j.indcrop.2019.111737. [ CrossRef ] [ Google Akademik ]
            • Kaneshima T.; Myoda T.; Nakata M.; Fujimori T.; Toeda K.; Nishizawa M. Camu-camu'nun ( Myrciaria dubia ) tohumlarından ve kabuğundan C -glikosidik ellagitanninlerin antioksidan aktivitesi . LWT – Gıda Bilimi Teknoloji 2016, 69 , 76–81. 10.1016/j.lwt.2016.01.024. [ CrossRef ] [ Google Akademik ]
            • Uluslararası Diyabet Federasyonu . Diyabet Hakkında: Diyabetle İlgili Gerçekler ve Rakamlar ; 2021; https://idf.org/aboutdiabetes/what-i...s-figures.html (2022–11–07'de erişildi).
            • Gothai S.; Ganesan P.; Park S.-Y.; Fakurazi S.; Choi D.-K.; Arulselvan P. Tip 2 diyabet tedavisi için doğal fito-biyoaktif bileşikler: hedef olarak iltihaplanma . Besinler. 2016, 8 , 461. 10.3390/nu8080461. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Mahmood N. Obezite ve diyabet gibi patolojik durumlarda kilo kaybı ve glisemik kontrol üzerine a-amilaz inhibitörlerinin gözden geçirilmesi . Zorunlu Clin Pathol. 2016, 25 , 1253–1264. 10.1007/s00580-014-1967-x. [ CrossRef ] [ Google Akademik ]
            • Lankatillake C.; Luo S.; Flavel M.; Lenon GB; Martı H.; Huyng T.; Dias DA Potansiyel enzim inhibitörleri için doğal ürün ekstraktlarının taranması: protokoller ve a-amilaz, a-glukosidaz ve lipaz tahlillerinde körlerin kullanımının standardizasyonu . Bitki Yöntemleri. 2021, 17 , 3. 10.1186/s13007-020-00702-5. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Bharti SK; Krishnan S.; Kumar A.; Kumar A. Antidiyabetik bitki bileşenleri ve bunların metabolik yolaklar üzerindeki etki biçimleri . orada. Av. endokrinol. Metab. 2018, 9 , 81–100. 10.1177/2042018818755019. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Peña Hidalgo M.; Espinoza Campos FO; Dr.Ramirez; Villacrés-Vallejo J.; Vásquez Torres D. Meksika'yı etkisi altına aldı ve estreptozotoksin neden olan balb/c üç amazon bitkisinin diyabet önleyici etkisi . Amazónica Bilimi 2022, 9 , 21–32. 10.22386/ca.v9i2.338. [ CrossRef ] [ Google Akademik ]
            • Schwertz MC; Maia JR d. P.; de Sousa RFS; Aguiar JPL; Yuyama LKO; Sıçanlarda camu-camu suyunun Lima ES Hipolipidemik etkisi . Rahip Nutr. Kampanyalar 2012, 25 , 35–44. 10.1590/S1415-52732012000100004. [ CrossRef ] [ Google Akademik ]
            • Asgar A. Fenolik bileşiklerin anti-diyabetik potansiyeli: Bir inceleme . Int. J. Food Prop.2013 , 16 , 91–103. 10.1080/10942912.2011.595864. [ CrossRef ] [ Google Akademik ]
            • Balisteiro DM; de Araujo RL; Giacaglia LR; Genovese MI Sağlıklı deneklerde berraklaştırılmış Brezilya yerli meyve sularının postprandiyal glisemi üzerindeki etkisi . Gıda Res. Int. 2017, 100 , 196–203. 10.1016/j.foodres.2017.08.044. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • De Souza Schmidt Gonçalves AE; Lajolo FM; Genovese MI Brezilya yerli meyvelerinin ve ticari dondurulmuş hamurların kimyasal bileşimi ve antioksidan/antidiyabetik potansiyeli . J. Agric. Gıda Kimyası 2010, 58 , 4666–4674. 10.1021/jf903875u. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vinholes J.; Lemos G.; Barbieri RL; Franzon RC; Vizzotto M. Araçá, butiá ve pitanga'nın antihiperglisemik ve antioksidan özelliklerinin in vitro değerlendirmesi . Gıda Biyosci. 2017, 19 , 92–100. 10.1016/j.fbio.2017.06.005. [ CrossRef ] [ Google Akademik ]
            • Moura MHC; Cunha MG; Alezandro MR; Genovese MI Fenolik açıdan zengin jaboticaba ( Plinia jaboticaba (Vell.) Berg) özleri, C57BL/6 farelerinde yüksek yağ-sakaroz diyetinin neden olduğu obeziteyi önler . Gıda Res. Int. 2018, 107 , 48–60. 10.1016/j.foodres.2018.01.071. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Al Shukor N.; Van Kampı J.; Gonzales GB; Staljanssens D.; Struijs K.; Zotti MJ; Raes K.; Smagghe G. Bitki fenolik bileşiklerinin anjiyotensin dönüştürücü enzim inhibe edici etkileri: yapı aktivite ilişkileri üzerine bir çalışma . J. Agric. Gıda Kimyası 2013, 61 , 11832–11839. 10.1021/jf404641v. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Felkle D.; Jarczynski M.; Kaleta K.; Zięba K.; Nazimek K. Antihipertansif tedavinin immünomodülatör etkileri: Bir derleme . Biyomed. Eczacı. 2022, 153 , 113287. 10.1016/j.biopha.2022.113287. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Miyaşita T.; Koizumi R.; Myoda T.; Sagan Y.; Niva K.; Watanabe T.; Minami K. Genç yetişkin insanlarda akış aracılı vazodilatasyon ve kan basıncı üzerine tek bir oral camu-camu ( Myrciaria dubia ) perikarp ekstresi dozuna ilişkin veriler . Veri Özeti. 2018, 16 , 993–999. 10.1016/j.dib.2017.12.009. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Anhê FF; Nachbar RT; Varin TV; Trottier J.; Dudonne S.; Le Barz M.; Perrine F.; Geneviere P.; Barbier Ö.; Desjardins Y.; Roy D.; Marette A. Camu-camu ( Myrciaria dubia ) ile tedavi, bağırsak mikrobiyotasını değiştirerek ve diyete bağlı obez farelerde enerji harcamasını artırarak obeziteyi önler . Bağırsak. 2019, 68 , 453–464. 10.1136/gutjnl-2017-315565. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vilaça do Nascimento O.; de Araújo Boleti AP; Schwertz M.; Lima ES Obezite tedavisinde camu-camu ve sürekli egzersizler ile diyet takviyesi . Rahip Nutr. 2018, 31 , 25–33. 10.1590/1678-98652018000100003. [ CrossRef ] [ Google Akademik ]
            • Nascimento OV; Boleti AP A; Yuyama LKO; Lima ES Diyet kaynaklı obezitenin sıçan modelinde Camu-camu ( Myrciaria dubia HBK McVaugh) meyvesi ile diyet takviyesinin etkileri . Bir. Acad. sütyen bilim 2013, 85 , 355–363. 10.1590/S0001-37652013005000001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Salomão-Oliveira A.; de Souza Costa S.; Albuquerque Marinho H. Metabolik sendrom: Camu-camu alımı ( Myrciaria dubia (Kunth) McVaugh) . Int. J. Gıda Bilimi Nutr. 2018, 3 , 5–13. [ Google Akademik ]
            • NQ yapın; Zheng S.; O S.; Nguyen QTN; Fang M.; Kim M.; Choi J.; Kim M.-J.; Jung J.; Yi T.-H. Myrciaria dubia (camu-camu) meyve özünün, RBL-2H3 hücrelerinde histamin H1 ve H4 reseptörlerini ve histidin dekarboksilazı inhibe ederek anti -alerjik etkileri . Antioksidanlar 2022, 11 , 104. 10.3390/antiox11010104. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Messaoudene M.; güvercin R.; Richard C.; Ponce M.; Diyop K.; Benlaifaoui M.; Nolin-Lapalme A.; Cauchois F.; Malo J.; Belkaid W.; İsnard S.; Fradet Y.; Dridi L.; Velin D.; Öster P.; Raoult D.; Giringelli F.; Boidot R.; Chevrier S.; Kylela DT; Brun YV; Falcone EL; Pilon G.; Onate FP; Gitton-Quent O.; Le Chatelier E.; Durand S.; Kromer G.; Elkrief A.; Marette A.; Castagner B.; Routy B. Doğal bir polifenol, antitümör aktivite uygular ve bağırsak mikrobiyotası üzerindeki etkileri yoluyla anti-PD-1 direncini atlatır . Kanser Keşfi 2022, 12 , 1070–1087. 10.1158/2159-8290.CD-21-0808. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [Google Akademik ]
            • NQ yapın; Zheng S.; Park B.; Nguyen QTN; Choi B.-R.; Fang M.; Kim M.; Jung J.; Choi J.; Yang S.-J.; Yi T.-H. Camu-camu meyve özü, yüksek glikoz kaynaklı insan keratinositlerinde NFAT ve Nrf2 sinyal yollarını düzenleyerek oksidatif stresi ve inflamatuar yanıtları inhibe eder . moleküller. 2021, 26 , 3174. 10.3390/moleküller26113174. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • da Silva FC; Hübner de Souza A.; Kempfer Bassoli B.; Alves Prates G.; Davut C.; de Oliveira Meneguetti DU; Correa AP; Berbigier de Oliveira I.; de Vargas Schons S.; Pessano Fialho MF; Silva Correa D.; Nascimento Picada J.; de Barros Falcão Ferraz A. Myrciaria dubia suyu (camu-camu) farelerde analjezik ve antiödemojenik aktiviteler sergiler . J.Med. Gıda 2021, 24 , 626–634. 10.1089/jmf.2020.0094. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Becerra BK; García DJ; Becerra BM; Ruiz RE; Sıçanlarda gentamisin tarafından indüklenen bir nefrotoksisite modelinde camu camu'nun (Myrciaria dubia) nefroprotektif etkisi . Chil Nutr. 2019, 46 , 303–307. [ Google Akademik ]
            • da Silva FC; Nascimento Picada J.; Faria Romão N.; de Oliveira Solla Sobral F.; Lemos D.; de Vargas Schons S.; de Mello TL; Melo Silva W.; da Silva Oliveira R.; Perboni Lucas C.; Pereira P.; Clasen Chaves V.; Reginatto FH; de Barros Falcão Ferraz A. Myrciaria dubia suyunun 28 günlük etanol tedavisine tabi tutulan farelerde antijenotoksik ve antimutajenik etkileri . J. Toksikol. çevre. Sağlık Bölüm A 2019, 82 , 956–968. 10.1080/15287394.2019.1671279. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Yunis-Aguinaga J.; Fernandes DC; Eto SF; Claudiano GS; Marcusso PF; Marinho-Neto FA; Fernandes JBK; de Moraes FR; de Moraes JRE Diyet camu camu, Myrciaria dubia, Nil tilapyasında immünolojik yanıtı arttırır . Balık Kabuklu Deniz Ürünleri İmmünolü. 2016, 58 , 284–291. 10.1016/j.fsi.2016.08.030. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Akachi T.; Şiina Y.; Kawaguchi T.; Kawagishi H.; Morita T.; Camu-camu'dan ( Myrciaria dubia ) elde edilen Sugiyama K. 1-Metilmalat , sıçanlarda D-galaktozamin kaynaklı karaciğer hasarını bastırdı . Biyosci. Biyoteknoloji biyokimya 2010, 74 , 573–578. 10.1271/bbb.90775. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Barrios Renteria JC; Mauricio-Sandoval EA; Espinoza LA; Cornelio-Santiago HP; Moreno-Quispe LA; Vega Portalatino EJ Camu camu'nun ( Myrciaria dubia ) bakterilere, mayalara ve parazitik protozoaya karşı antimikrobiyal potansiyeli: bir inceleme . Rahip Fak. Nac. Agron. Medellin 2022, 75 , 9989–9998. 10.15446/rfnam.v75n2.98010. [ CrossRef ] [ Google Akademik ]
            • Pardo-Aldave K.; Pareja-Vásquez M.; Guillen A.; Ureta-Tapia JM Camu-camu'nun (Myrciaria dubia) oral mikroorganizmalara karşı in vitro antimikrobiyal aktivitesi : sistematik bir inceleme . Peru Med. Tecrübe. Salud Publica 2019, 36 , 573–582. 10.17843/rpmesp.2019.364.4270. [ PubMed ] [ CrossRef ] [ Google Scholar ]

            Yorum yap


            • #7
              Camu-camu (Myrciaria dubia) umut verici antimalarial ve antischistosomicidal özelliklere sahip yeni bir biyoaktif bileşik kaynağı olarak tohumları

              Mariana Araújo Vieira do Carmo 1, Marina Fidelis 2, Caroline Andolfato Sanchez 3, Aline Pereira Castro 4, Ihosvany Kampları 5, Fábio Antônio Colombo 4, Marcos Jose Marques 4, takao miyoda 6, daniel granato 7, Luciana Azevedo 3
              üyelikler yıkılmak üyelikler
              • 1Alfenas Federal Üniversitesi, Beslenme Fakültesi, Alfenas, MG, Brezilya. Elektronik adres: marianavieira06@hotmail.com.
              • 2Ponta Grossa Devlet Üniversitesi, Gıda Mühendisliği Bölümü, Ponta Grossa, PR, Brezilya.
              • 3Alfenas Federal Üniversitesi, Beslenme Fakültesi, Alfenas, MG, Brezilya.
              • 4Federal Alfenas Üniversitesi, Biyomedikal Bilimler Enstitüsü, Alfenas, MG, Brezilya.
              • 5Federal Alfenas Üniversitesi, Fizik Bölümü, Alfenas, MG, Brezilya.
              • 6Tokyo Ziraat Üniversitesi, Gıda ve Kozmetik Bilimi Bölümü, Abashiri, Japonya.
              • 7Gıda İşleme ve Kalite, Üretim Sistemleri Birimi - Doğal Kaynaklar Enstitüsü Finlandiya (Luke) - Tietotie 2, Espoo, Finlandiya.
              ücretsiz makale Soyut


              Paraziter hastalıklar, mortalite ve morbidite üzerindeki sonuç etkileri nedeniyle dünya çapında dikkat çekmiştir. Buna göre, tedavi için yeni alternatifler yaratmayı amaçlayan birkaç bitki antiparaziter aktivite açısından taranmıştır. Bu hastalıklar ihmal edilmiş ve dünya çapında dikkat çekmemiştir (günümüzde), sağlık endişeleri kronik hastalıklara odaklanmıştır, ancak paraziter hastalıklara odaklanmak ve bitki özleri gibi profilaktik alternatifler aramak gerekir. Camu-camu (Myrciaria dubia) tohumları, zengin bir antioksidan, antimutajenik, sitotoksik, antienflamatuar, antimikrobiyal, antihipertansif ve nöroprotektif bileşikler kaynağı olmasına rağmen, antiparaziter etkileri hakkında hiçbir şey bilinmemektedir. Bu nedenle, bu çalışmada camu-camu tohumlarının beş ekstraktını (%100 su, %100 etil alkol, %50 su + %50 etil alkol, %25 su + %75 etil alkol ve %75 su + %25 etil alkol) in vitro antimalaryal, antişistozomisidal, leishmanisidal ve antihemolitik etkilerine göre. Ekstraktlar antişistozomisidal (EDTüm intra-eritrositik evrelerde hem W2 hem de 3D7 suşları için 418,4 ila >1000,0 µg/mL arasında 50 değer) ve antimalarial aktiviteler ( IC50 değerleri 24,2 ila 240,8 µg/mL arasında). Korelasyon analizi, toksik etkilerin esas olarak metilveskalagin (r = -0,548 ila -0,951, p < 0,05) ve 2,4-dihidroksibenzoik asit (r = -0,612 ila -0,917, p < 0,05) içeriklerine atfedilebileceğini göstermiştir. Ayrıca, anti-hemolitik etki, metilveskalagin ile ilişkilendirilmiştir (r = -0.597, p < 0.05). Leishmaniasis ve IMR90 normal hücreler için herhangi bir toksik etki gözlenmemiştir. Burada, antiparazitik ve anti-hemolitik aktivitelerle eş zamanlı bir ilişki sunduğunda, metilveskalagin en büyük ilgiyi çeken biyoaktif bileşikti.

              Anahtar Kelimeler: Anti-hemolitik aktivite; antiparaziter; hidroalkolik ekstrakt; Methylvescalagin; Myrciaria dubia; Paraziter hastalıklar.

              Telif hakkı © 2020 Elsevier Ltd. Tüm hakları saklıdır.

              Yorum yap


              • #8
                Vitamin C Kaynağı Olarak Subtropik ve Tropik İklim Meyve Türleri

                Zeynel DALKILIÇ Aydın Adnan Menderes Üniversitesi Ziraat Fakültesi Bahçe Bitkileri Bölümü, Aydın, Türkiye

                Özet


                Vitaminler insan beslenmesinde hayati öneme sahiptir. Bunlardan vitamin C eksikliği iskorbüt hastalığına neden olur. Kadınların en az 75 mg/kişi ve erkeklerin en az 90 mg/kişi ile en çok 2000 mg/kişi arasında günlük vitamin C alması tavsiye edilmektedir. Fazlası vücutta birikmez, atılır. İnsanlar vücutlarında doğal olarak askorbik asidi sentezleyemezler. Bu nedenle askorbik asit günlük olarak besin kaynaklarından alınmak zorundadır. Orta boy bir portakalda 70-83 mg ve altıntopta 88 mg vitamin C bulunur. Vitamin C mikroorganizmalara karşı vücudun direncini artırır; kan damarlarını sağlamlaştırır; kemikler, eklemler ve damarlardaki kollajen yapımı için gerekli olan 4-hydroxyproline amino asidini sentezler; vücutta noradrenalin sentezlenmesini sağlar; kolestrolden safra sentezlenmesini sağlar; kuvvetli antioksidandır; vitamin E (tokoferol) ve vitamin B9 (folik asit)’un kararlı hâle gelmesini sağlar; karnitin sentezini sağlar ve yağ asitlerinin taşınmasına katkıda bulunur. En fazla vitamin C (mg/100g) içeren subtropik ve tropik meyve türleri göreceli olarak şu şekilde gruplandırılabilir. 1.grup (>600 mg/100g): acerola (Malpighia glabra) 4500, kamu kamu (Myrciaria dubia) 2280, kivi (Actidinia chinensis) 1008; 2.grup (600-100 mg/100g): guava (Psidium guajava) 600, amla (Phyllanthus emblica) 600, kaju (Anacardium occidentale) 372, Trabzon hurması (Diospyros kaki) 210, demirhindi (Tamarindus indica) 202, siyah sapot (Diospyros nigra) 192, yıldız meyvesi (Averrhoa bilimbi) 183, ananas (Ananas comosus) 165; 3.grup (100-50 mg/100g): feijoa (Acca sellowiana) 93, longan (Dimocarpus longan) 84, liçi (Litchi chinensis) 72, papaya (Carica papaya) 82, mango (Mangifera indica) 80, nar (Punica granatum) 72, bel (Aegle marmelos) 60, portakal (Citrus sinensis) 53, limon (Citrus limon) 53, Java eriği (Syzygium cumini) 51, atemoya (Annona squamosa × A.cherimola) 50; 4.grup (<50 mg/100 g): rambutan (Nephelium lappaceum) 48, sugarapple (Annona squamosa) 42, muz (Musa spp.) 36, altıntop (Citrus × paradisi) 33, plantain (Musa × paradisiaca) 31, beyaz sapot (Casimiroa edulis) 30, çarkıfelek meyvesi (Passiflora edulis) 30, ejder meyvesi (Hylocerus undatus) 30, graviola (Annona muricata) 30, ekmek meyvesi (Artocarpus altilis) 29, mandarin (Citrus reticulata) 27, durian (Durio zibethinus) 24, avokado (Persea americana) 21, cempedak (Artocarpus polyphema) 20, fil elması (Feronia elephantum) 18, çerimoya (Annona cherimola) 16, sapot (Manilkara zapota) 15, incir (Ficus carica) 15, jackfruit (Artocarpus heterophyllus) 14, keçiboynuzu (Ceratonia siliqua) 8, Hindistan cevizi (Cocos nucifera) 3, mangostan (Garcinia mangostana) 3, yenidünya (Eriobotrya japonica) 3, langsat (Lansium parasiticum) 1, zeytin (Olea europaea) <1.

                Anahtar Kelimeler: L-askorbik asit, İnsan sağlığı, Subtropik ve tropik iklim meyveleri

                Subtropical and Tropical Fruit Species as Vitamin C Source​​​​​​​

                Abstract


                Vitamins have a vital importance in human nutrition. From these, vitamin C deficiency causes scurvy disease. It was suggested to be consumed between at least 75 mg/person in females and 90 mg/person in males, and the most 2000 mg/person daily. The excess of it does not accumulate, but discarded. The natural form of vitamin C is L-ascorbic acid (hexuronic acid, C6H8O6, M.W.=176.12 g/L). It is a vitamin that water soluble, white, acidic, and sensitive to light. Humans cannot naturally synthesize ascorbic acid in their bodies. Therefore, ascorbic acid has to be taken daily by food sources. There is 70-83 mg in an orange and 88 mg in a grapefruit. Vitamin C has several health benefits as follows: increases body’s resistance against to microorganisms; strengthen blood veins; synthesizes 4-hydroxyproline amino acid required for making collagen in bones, joints, and veins; provides noradrenalin synthesis in the body; provides the synthesis of gall (bile) from cholesterol; is a strong antioxidant; provides the stabilization of vitamin E (tocopherol) and vitamin B9 (folic acid); provides carnitine synthesis, and contributes the transport of fatty acids. The highest amount of vitamin C containing subtropical and tropical fruit crops are relatively grouped in as follows (mg/100g): Group 1 (>600 mg/100g): acerola (Malpighia glabra) 4500, camu camu (Myrciaria dubia) 2280, kiwifruit (Actidinia chinensis) 1008; Group 2 (600-100 mg/100g): guava (Psidium guajava) 600, aonla (Phyllanthus emblica) 600, cashew apple (nut) (Anacardium occidentale) 372, persimmon (Diospyros kaki) 210, tamarind (Tamarindus indica) 202, black sapote (Diospyros nigra) 192, carambola (Averrhoa bilimbi) 183, pineapple (Ananas comosus) 165; Group 3 (100-50 mg/100g): feijoa (Acca sellowiana) 93, longan (Dimocarpus longan) 84, litchi (Litchi chinensis) 72, papaya (Carica papaya) 82, mango (Mangifera indica) 80, pomegranate (Punica granatum) 72, bael (Aegle marmelos) 60, orange (Citrus sinensis) 53, lemon (Citrus limon) 53, jamun (Syzygium cumini) 51, atemoya (Annona squamosa × A.cherimola) 50; Group 4 (<50 mg/100 g): rambutan (Nephelium lappaceum) 48, sugarapple (Annona squamosa) 42, banana (Musa spp.) 36, grapefruit (Citrus × paradisi) 33, plantain (Musa × paradisiaca) 31, white sapote (Casimiroa edulis) 30, passiflora (Passiflora edulis) 30, pitaya (Hylocerus undatus) 30, graviola (Annona muricata) 30, breadfruit (Artocarpus altilis) 29, mandarin (Citrus reticulata) 27, durian (Durio zibethinus) 24, avocado (Persea americana) 21, chempedak (Artocarpus polyphema) 20, woodapple (Feronia elephantum) 18, cherimoya (Annona cherimola) 16, sapodilla (Manilkara zapota) 15, fig (Ficus carica) 15, jackfruit (Artocarpus heterophyllus) 14, carob (Ceratonia siliqua) 8, coconut (Cocos nucifera) 3, mangosteen (Garcinia mangostana) 3, loquat (Eriobotrya japonica) 3, langsat (Lansium parasiticum) 1, olive (Olea europaea) <1.

                Keywords: L-ascorbic acid, Human health, Subtropic and tropic climate fruit crops

                1.Giriş

                Meyveler insan beslenmesinde vitamin ve mineral madde kaynağı olarak önemli yere sahiptir (Karadeniz, 2004; Small, 2012). Laskorbik asit (AsA, AA) bazı önemli fizyolojik olaylarda rol oynayan bitkilerde en yaygın olarak bulunan suda çözünebilen antioksidan ve enzim kofaktörlerinden birisidir (Davey ve ark., 2000; Suekawa ve ark., 2017). Vitamin C eksikliğinin başlıca belirtisi iskorbüt hastalığına neden olmasıdır.

                2.Tarihçe

                Jacques Cartier 1536’da, vitamin C’ye dayanan bir diyet eksikliği hastalığının açık tarifini vermiştir. 1747-1753’te İngiliz doktor James Lind tarafından turunçgil meyvesi ya da suyu tüketilerek tedavisi bulunmuştur (Berg ve ark., 2002). 1928’de ilk kez Albert Szent Györgi tarafından özütlenmiştir (Walji, 2005). Györgi bu çalışmasından dolayı 1937’de Nobel Fizyoloji ya da Tıp ödülüne layık görülmüştür. 1932’de limondan izole edilen iskorbüt karşıtı vitamin C, Latince scorbutus kelimesine atfen “askorbik asit” olarak isimlendirilmiştir. Günlük en az 75 mg/kişi (Özata, 2017), en çok 2000 mg/kişi (Jopp, 2014) alınması gerekir. Fazlası zararlı değildir. Ancak 1000 mg’dan fazlası idrarla atılmaktadır (Özata, 2017). “Ne yiyorsan, osun.” “Yaşamak için ye ve yemek için yaşama.” (İngiliz atasözü, ~1410) “Hastalık yok, hasta var.” (Hippokrates, M.Ö. 460 Kos-M.Ö. 360 Larissa) “Allah her derde bir deva yaratmıştır.”

                3.Vitamin C Sentezi ve İşlevi

                Vitamin C’nin doğal formu L-askorbik asittir (hexuronic acid, C6H8O6, M.A.=176.12 g/L). Suda çözünen, beyaz, asidik, ışıktan etkilenen bir vitamindir (Bingöl, 1977). Ayrıca bir oksidasyon ürünü olan L-dehidroaskorbik asit (DHA) de biyolojik aktivite sergiler. DHA insan vücudunda kolaylıkla askorbik aside dönüştürülebildiği için meyve ve sebzelerdeki vitamin C aktivitesi için hem askorbik asidin hem de DHA’nın toplamının ölçülmesi önemlidir. Ne var ki, pek çok araştırmada DHA değerleri dikkate alınmadan askorbik asit miktarı rapor edilmektedir. Çoğu bahçe bitkisindeki DHA, toplam vitamin C’nin %10’undan daha azını temsil etse de depolama süresince DHA artış eğilimi göstermektedir (Lee ve Kader, 2000). İnsanlar vücutlarında doğal olarak askorbik asidi sentezleyemezler (esansiyel). Bu nedenle askorbik asit günlük olarak besin kaynaklarından alınmak zorundadır. Orta boy bir portakalda 70-83 mg, altıntopta 88 mg, bir su bardağı portakal suyunda 124 mg vitamin C bulunur. Vitamin C mikroorganizmalara karşı vücudun direncini artırır; kan damarlarını sağlamlaştırır; kemikler, eklemler ve damarlardaki kollajen yapımı için gerekli olan 4-hydroxyproline amino asidini sentezler (Berg ve ark., 2002); vücutta noradrenalin sentezlenmesini sağlar; kolestrolden safra sentezlenmesini sağlar; kuvvetli antioksidandır (Carr ve Maggini, 2017); vitamin E (tokoferol) ve vitamin B9 (folik asit)’un kararlı hâle gelmesini sağlar; karnitin sentezini sağlar ve yağ asitlerinin taşınmasına katkıda bulunur. Vitamin C kuşburnu, siyah üzüm, yeşil biber, mango, karnabahar, lahana, brokoli, portakal, mandarin, limon, altıntop, patates, domates, bezelye, pırasa, muz, çilek, şalgam ve yeşil yapraklı sebzelerde bulunur (Özata, 2017). Diğer canlıların aksine, insanlar l-gulono-γlactone oxidase (GLO) geninin mutasyona uğramasından dolayı, vücutlarında askorbik asidi doğal olarak sentezleyemezler. Kadınların en az 75 mg/gün (Anonim, 2000) ya da 80-95 mg/gün (Anonim, 2013) ve erkeklerin 90 mg/gün (Anonim, 2000) ya da 90-110 mg/gün (Anonim, 2013) vitamin C tüketmesi tavsiye edilmektedir (Chisnall ve Macknight, 2017; Fenech ve ark., 2019). Diğer vitaminlerin aksine işlevini yerine getirmeden önce vitamin C’nin biyokimyasal olarak değiştirilmesi şarttır (Berg ve ark., 2002). Askorbik asit bazı hidroksilaz enzimlerinin (prolil hidroksilaz) ve violakzantin de-epoksidaz gibi bazı enzimlerin yardımcı faktörüdür (Smirnoff, 1996). Askorbik asit biyosentezinde askorbat peroksidaz ile mono-dehidroaskorbat redüktaz enzimleri rol oynar. Bakteriler askorbik asidi sentezleyemezken, anaerobik solunumda karbon kaynağı olarak kullanarak fermente edebilir. Meyvelerde ve sebzelerde yabani tiplerde askorbik asidi miktarı daha fazlayken, kültüre alınma ile birlikte azalmıştır. Askorbik asit miktarı genellikle meristematik dokularda, çiçekler ya da genç meyvelerde, kök ucunda ve stolon veya yumruların büyüme ucunda yüksek miktarda bulunur. Turunçgil meyveleri yüksek askorbik asit miktarı (3 μmol/g taze ağırlık)) ile ünlenmiştir. Kivideki askorbik asit miktarı 7 μmol/g taze ağırlık) iken Myrciaria dubia meyvesinde 170 μmol/g taze ağırlık)’e kadar çıkabilir (Gest ve ark., 2013). Değişik bitki türlerinde yapılan çalışmalar ile L-galactono-1,4-lactone (L-GL)’un askorbik aside dönüştürüldüğü konusunda fikir birliğine varılmıştır. Bu reaksiyon mitokondrinin iç zarında bulunan L-galactone-1,4-lactone dehydrogenase (GLDHase) tarafından sentezlenir (Smirnoff ve ark., 2001; Smirnoff, 2018). Askorbik asidin ilk kez bitkilerde başlıca Smirnoff-Wheeler enzim biyosentez yolağı ile sentezlendiği belirlenmiştir (Conklin ve ark., 2000). Bunun yanında son yıllarda dgalacturonate, l-gulose ve myo-inositol yolaklarından da askorbik asit sentezlendiği ortaya çıkarılmıştır (Suekawa ve ark., 2017). Askorbik asit miktarı bitki türüne, bulunduğu organa ve bitkinin büyüme safhasına göre ve ayrıca ışık, sıcaklık, tuz ve kuraklık gibi çevresel şartlara bağlı olarak da değişebilmektedir.

                4.Subtropik ve Tropik Meyve Türlerinin Vitamin C Kapsamı​​​​​​​

                Son birkaç yıldır tropikal meyvelerin tüketimi aroma, tat ve besin değerleri yönünden zengin olmaları nedeniyle dünya çapında artmaktadır (Delva ve Goodrich Schneider, 2013). Bitkiler âlemi (Simpson, 2019) içinde yer alan bazı türler, içerdikleri değişik organik maddeler yönünden insan beslenmesinde öne çıkmaktadır. Bu maddelerden birisi de vitamin C’dir. Çizelge 1’de taze subtropik ve tropik meyvelerin 100 g yenilebilir bölümündeki vitamin C miktarı azalan sırada verilmiştir (Anonim, 2019). Meyvelerin rapor edilen vitamin C miktarları kullanılan genotip, yetiştirilen yöre, çevresel şartlar, uygulanan kültürel işlemler ve analiz yöntemlerine göre değişiklik gösterebilmektedir. En fazla vitamin C (mg/100g) içeren subtropik ve tropik meyve türleri göreceli olarak aşağıdaki gibi gruplandırılabilir:

                1.grup (>600 mg/100g): Acerola (Malpighia glabra) 4500, kamu kamu (Myrciaria dubia) 2280, kivi (Actidinia chinensis) 1008

                2.grup (600-100 mg/100g): Guava (Psidium guajava) 600, amla (Phyllanthus emblica) 600, kaju (Anacardium occidentale L.) 372, Trabzon hurması (Diospyros kaki) 210, demirhindi (Tamarindus indica) 202, siyah sapot (Diospyros nigra) 192, yıldız meyvesi (Averrhoa bilimbi) 183, ananas (Ananas comosus) 165

                3.grup (100-50 mg/100g): Feijoa (Acca sellowiana) 93, longan (Dimocarpus longan) 84, liçi (Litchi chinensis) 72, papaya (Carica papaya) 82, mango (Mangifera indica) 80, bel (Aegle marmelos) 60, portakal (Citrus sinensis) 53, limon (Citrus limon) 53, Java eriği (Syzygium cumini) 51, atemoya (Annona squamosa X A.cherimola) 50

                4.grup (<50 mg/100 g): Rambutan (Nephelium lappaceum) 48, sugarapple (Annona squamosa) 42, muz (Musa spp.) 36, altıntop (Citrus × paradisi) 33, plantain (Musa × paradisiaca) 31, beyaz sapot (Casimiroa edulis) 30, çarkıfelek meyvesi (Passiflora edulis) 30, ejder meyvesi (Hylocerus undatus) 30, graviola (Annona muricata) 30, ekmek meyvesi (Artocarpus altilis) 29, mandarin (Citrus reticulata) 27, durian (Durio zibethinus) 24, avokado (Persea americana) 21, cempedak (Artocarpus polyphema) 20, fil elması (Feronia elephantum) 18, çerimoya (Annona cherimola) 16, sapot (Manilkara zapota) 15, jackfruit (Artocarpus heterophyllus) 14, keçiboynuzu (Ceratonia siliqua) 8, Hindistan cevizi (Cocos nucifera) 3, mangostan (Garcinia mangostana) 3, langsat (Lansium parasiticum) 1, zeytin (Olea europaea) <1. 100 g yenilebilir meyvede bulunan vitamin C miktarı 100 mg’dan fazla olarak kaydedilen subtropik ve tropik meyveler hakkında derlenen kısa bilgiler aşağıda verilmiştir.

                1. Acerola (Barbados kirazı, Malpighia glabra L., M.emarginata DC., 2n=2x=20, Malpigiaceae): Anavatanı Orta Amerika, Güney Amerika’nın kuzeyi ve Karayipler’dir (Nakasone ve Paull, 1998; Janick ve Paull, 2008). Brezilya acerola üretiminde 11,000 hektar alanda yaklaşık 3 t/ha verimle toplam 32,990 ton/yıl ile lider ülkedir (Pommer ve Barbosa, 2009). Ağacı 3-5 m boylanır. Çiçekler 2.0-2.5 cm genişliğinde 5 taç yapraklı, 10 erkek organlı, 3 karpelli 1 dişi organlı hermafrodittir (er-dişi, erselik) (Nakasone ve Paull, 1998). Meyveler eriksi (drupe) tipte, 1-4 cm çapında ve 2-15 g ağırlığındadır. Meyve büyümesi ve gelişmesi üç safhaya ayrılabilir: yeşil, turuncu ve parlak kırmızı. Meyvenin olgunlaşması ile birlikte raf ömrü ve yola dayanımı azalmaktadır (Delva ve Goodrich Schneider, 2013; Ergun ve ark., 2014; Prakash ve Baskaran, 2018). Vitamin C miktarı en yüksek (957-4827 mg/100 g) meyvedir. Ham meyvelerin vitamin C miktarı daha yüksekken, olgunlaşma sürecince miktar azalır (Santini ve Navarez, 1955; Itoo ve ark., 1990; Vendramini ve Trugo, 2000; Righetto ve ark., 2005; Mezadri ve ark., 2006; Assis ve ark., 2008). Bazı eczacılık şirketleri acerola meyvelerini ticari ürünlerinde vitamin C kaynağı olarak kullanmaktadırlar. Taze meyvesinden elde edilen suyu, diğer meyve içecekleri karışımları ve şerbet yapımında vitamin C takviyesi olarak yararlanılmaktadır (Lim, 2012).

                2. Camu camu (Myrciaria dubia Kunth (McVaugh), 2n=2x=22, Myrtaceae): Anavatanı periyodik olarak su baskınına maruz kalan tropikal Amazon havzasının yağmur ormanlarıdır. Peru’nun Loreto bölgesinde yaklaşık 1345 ha doğal camu camu plantasyonu bulunurken, Loreto’da 6475 ha, San Martin’de (110 ha) ve Ucayali’de 5930 ha alanda kültürü yapılmaktadır. Bitki 4-8 m boylanan çalı ya da küçük ağaççıklar oluşturur. Çiçekleri hermafrodit olmasına rağmen dişi ve erkek organların farklı zamanlarda olgunluğa gelmelerinden dolayı fakültatif allogami gözlenir. Meyveleri 1.0-5.0 cm çapında, 11.7 g ağırlığında, küresel üzümsü (berry) ya da eriksidir (Castro ve ark., 2018). Camu camu, aceroladan sonra en yüksek vitamin C miktarına (1400-2280 mg/100 g) sahiptir (Justi ve ark., 2000; Chirinos ve ark., 2010; Castro ve ark., 2018).

                3. Kiwifruit (kivi, Actinidia arguta (Sieb. and Zucc.) Planch. ex Miq. 2n=2x=58, A.chinensis L., 2n=4x=116, A.deliciosa (A. Chev.) A. Chev. 2n=6x=174): Anavatanı güneydoğu Asya ve Çin’dir. Çin 2,036,168 t ile üretimde birinci sıradadır (Anonim, 2018). Bitkisi 9 m’ye kadar yükselebilen sarılıcı yapıdadır. Kışın yaprağını döker. Çiçekleri dioik, 5-6 petalli, 2.5-5.0 cm’dir. Meyveleri yaklaşık 6.3 cm uzunluğunda, yumurtamsı-eliptik, üzümsüdür (Morton, 1987). Vitamin C miktarı 52-89 (Zhang ve ark., 2017), 23-430 (Nishiyama ve ark., 2004) ve 1008 mg/100 g’dır (Latocha ve ark., 2010).

                4. Guava (Psidium guajava L., 2n=2x=22, Myrtaceae): Anavatanı Meksika’nın güneyi ve Orta Amerika’dır (Morton, 1987). Hindistan 1,700,000 t üretim ile birinci sıradadır. Çiçekleri hermafrodit, 5-6 çanak yapraklı, 4-5 taç yapraklı, 1.0-2.0 cm uzunluğundadır (Pommer ve Murakami, 2009). Meyveleri 5-10 cm uzunluğunda, yuvarlak ya da oval şekilli, olgunlaştığında kokulu (Morton, 1987) ve üzümsü yapıdadır. Vitamin C miktarı 85.9-104.5 (Oliveira ve ark., 2010), 100.0-134.3 (Pommer ve Murakami, 2009), 56-600 mg/100 g’dır (Morton, 1987).

                5. Aonla (amla, Hint bektaşi üzümü, Phyllanthus emblica, 2n=2x=98, 104, Euphorbiaceae): Anavatanı güneydoğu Asya ve Hindistan’ın kuzeyidir. Hindistan 1,221,000 t üretim ile birinci sıradadır. Ağacı 10-30 m boylanabilir. Kışın yaprağını döker (Wali ve ark., 2015). Çiçekleri 1.5-2.5 cm uzunluğunda, monoik yapıdadır. Meyveleri eriksi yapıda, 2.5- 5.0 cm çapındadır (Morton, 1987). Vitamin C miktarı 347 (taze), 197 (kuru) (Salunkhe ve Kadam 1995); 600 (taze), 2428-3470 (kuru) (Wali ve ark., 2015) ve 625 mg/100 g’dır (Morton, 1987).

                6. Cashew apple, cashew nut (kaju, Anacardium occidentale L., 2n=2x=42, Anacardiaceae): Anavatanı Amazon havzasının da içinde yer aldığı Latin Amerika’dır (Aliyu ve Awopetu, 2007). Brezilya 1,541,010 t taze meyve ve Vietnam 2,663,885 t tohum üretimi ile ilk sıradadır (Anonim, 2018). Ağacı 6-15 m boylanabilir. Çiçekleri 5 sepalli ve 5 petallidir. Popülasyonda ya hermafrodit, dişi ve erkek çiçekleriyle polimorfik (Aliyu ve Awopetu, 2007) ya da andomonoik (Paiva ve ark., 2009) bir türdür. Meyveleri yalancıdır. Armuda benzeyen meyveleri taze olarak tüketilmez. Böbrek ya da boks eldivenine benzeyen tohumları tüketilebilir (Morton, 1987; Aliyu ve Awopetu, 2007). Vitamin C miktarı 147-372 (Morton, 1987), 210- 306 (Pommer ve Barbosa (2009), 268-356 mg/100 g’dır (Paiva ve ark., 2009).

                7. Persimmon (Trabzon hurması, Diospyros kaki, 2n=6x=90, Ebenaceae): Anavatanı Japonya, Çin, Burma ve Hindistan’ın kuzeyidir. Çin 3,084,458 t üretim ile birinci sıradadır (Anonim, 2018). Ağacı 4.5-18.0 m boylanabilir. Kışın yaprağını döker. Çiçekleri hermafrodit, dişi ya da erkek (poligam) yapıda olabilir. Meyvesi üzümsüdür. Taze iken yenebilen veya tanenli formları bulunur. Vitamin C miktarı 47-66 (Mukhtar ve ark., 2019) ve 210 mg/100 g (Lee ve Kader, 2000) arasındadır.

                8. Tamarind (demirhindi, Tamarindus indica, 2n=2x=24, 26, Leguminosae): Anavatanı tropikal Afrika ve Sudan’dır. Hindistan en çok demirhindi üreten ülkedir. Ağacı 24-30 m boya ve 7.5 m çapa ulaşabilir. Çiçekleri 5 petalli ve küçüktür. Meyveleri 2-3 cm uzunluğunda bakla (pod) tipindedir (Morton, 1987). Vitamin C miktarı 0.7-3.0 (Morton, 1987) ve 138-202 (Okello ve ark., 2018) arasında değişmektedir.

                9. Black sapote (kara sapot, Diospyros digyna Jacq., D.nigra, Ebenaceae): Anavatanı Orta Amerika ve Meksika’dır. Ağacı 25 m’ye kadar boylanabilir. Çiçekleri 1.0-1.6 cm uzunluğunda, andromonoiktir. Meyveleri 4-5 cm genişliğinde üzümsüdür (Morton, 1987). Vitamin C miktarı 69.8-180.7 mg/100 g’dır (ArellanoGómez ve ark., 2005).

                10. Carambola (yıldız meyvesi, Averrhoa carambola L., A.bilimbi, 2n=2x=22, Oxalidaceae): Anavatanı Güney Doğu Asya, Sri Lanka, Molucca’dır. Ağacı 6-9 m boya ulaşabilir. Çiçekleri yaprak koltuklarındaki salkımlarda pembemsi mor petallidir. Meyveleri 5-6 köşeli, 6-15 cm uzunluğundadır Vitamin C miktarı 15.5 (A.bilimbi)-26-53 (A.carambola) (Morton, 1987), 35 (Salunkhe ve Kadam, 1995; Nakasone ve Paull, 1998) ve 121 (A.carambola)-183 (A.bilimbi) mg/100 g’dır (Yan ve ark., 2013).

                11. Pineapple (ananas, Ananas comosus (L.) Merr., 2n=2x=50, Bromeliaceae): Anavatanı Güney Amerika’dır. Costa Rica 3,418,155 t üretim ile birinci sıradadır (Anonim, 2018). Bitkisi 0.8-1.0 m boylanan rozet şeklinde yapraklıdır. Çiçekleri hermafrodittir. Meyveleri birleşik meyve yapısındadır. Vitamin C miktarı 27.0-165.2 mg/100 g’dır (Morton, 1987). Türkiye’de meyve ve sebze türlerindeki vitamin C miktarı ilk kez Hisar (1946) tarafından yapılmıştır. Limon, portakal, mandarin ve turunç meyvelerindeki vitamin C miktarları meyve suyunda (mg/100 ml) yerli limon 0.39-0.73, Suriye limonları 0.41-0.82, Dörtyol portakalı 0.27-0.58, Yafa portakalı 0.41-0.53, Rize portakalı 0.52-0.73, mandarinler 0.29-0.39, turunçlar 0.26-0.36 bulunmuştur. Meyve kabuğunda yapılan analizlerde vitamin C miktarı meyve suyunda bulunandan yaklaşık 2.5-3.0 katı daha fazladır. Meyve kabuğu ve meyve suyunda sırasıyla limonlarda 175 ve 60, portakallarda 150 ve 47 mg/100 g’dır (Hisar, 1946). Vitamin C miktarı meyvenin genotipi ile büyüme ve gelişme safhasına göre değişmektedir. Genellikle genç, olgunlaşmamış meyveler, hücre bölünmesini ve genişlemesini desteklemek amacıyla çok yüksek miktarda vitamin C içermektedir. Daha sonra olgunlaşma safhaları süresince vitamin C miktarı çilek, siyah frenk üzümü ve kivi gibi meyvelerde kısmen artar ya da sabit kalırken; elma ve acerola gibi türlerde önemli derecede azalmaktadır. Bu sonuçlara göre, askorbik asit biyosentezinde rol oynayan genlerin ifade edilmesinde farklı çeşitlerin, yetiştirilme şartlarının ve kültürel uygulamaların etkili olduğunu ortaya koymaktadır (Mellidou ve ark., 2018). Küresel iklim değişikliğinin yüksek sıcaklık ve kuraklık gibi çevresel şartlarda aşırı artışa yol açabileceği tahmin edilmektedir. Abiyotik stres etmenlerine tolerant bitki çeşitlerinin geliştirilmesi, artan dünya nüfusunun besin güvenliğini garanti altına almak için kritik öneme sahiptir. Stres şartlarına daha tolerant olduklarından dolayı vitamin C miktarı artırılmış bitkilerin elde edilmesi bu konudaki dayanıklılığı artırmanın bir yolu olabilecektir (Macknight ve ark., 2017).

                5.Sonuç

                Meyvelerdeki vitamin C tayini ile ilgili yapılan çalışmalarda değişik tayin yöntemleri ve meyve bölümleri kullanılmasından dolayı elde edilen bulgular farklılık göstermektedir. Aynı türün yabani genotiplerinde vitamin C miktarı daha yüksektir. Bunun nedeninin muhtemelen kültüre alınma sürecinde ise askorbik asit de dâhil diğer pek çok antioksidan maddenin aleyhine olacak şekilde meyve büyüklüğü ve verim lehine seçim yapılması olduğu düşünülmektedir. Son yıllarda moleküler biyolojik yöntemler kullanılarak yürütülen genomik, transkriptomik, proteomik, biyoinformatik ve gen aktarımı çalışmalarıyla bitki türlerindeki askorbik asit biyosentezi yolakları hakkında daha fazla bilgi elde edilmektedir. Bu bilgilerden yola çıkılarak ileride yapılacak ıslah çalışmalarında verim ile birlikte vitamin C miktarı da yüksek yeni çeşitlere sahip olunması insan beslenmesinde ve sağlığında önemli yer tutabilecektir.

                Ek 1

                Bu makale, Covid-19 pandemisinde hayatını kaybedenler ile Prof. Dr. F. Ekmel TEKİNTAŞ’ın aziz hatırasına adanmıştır.

                Ek 2

                Bu makale, 5-9 Mart 2020 tarihleri arasında Tunus Hammamet’te düzenlenen “III. International Agriculture Congress” adlı etkinlikte sözlü bildiri olarak sunulmuş ve özeti kongre bildiri özet kitabında basılmış bildirinin tam metin halidir.

                Kaynaklar

                Aliyu, O.M., Awopetu, J.A. 2007. Chromosome studies in Cashew (Anacardium occidentale L.). African Journal of Biotechnology 6(2): 131-136. Amarante, do C.V.T. Souza, de A.G., Benincá, T.D.T., Steffens, C.A. 2017. Fruit quality of Brazilian genotypes of feijoa at harvest and after storage. Pesquisa Agropecuária Brasileira, Brasília 52(9):734-742. DOI: 10.1590/S0100- 204X2017000900005 Anonim, 2000. Dietary reference intakes for vitamin C, vitamin E, selenium, and carotenoids. Food and Nutrition Board Panel on Dietary Antioxidants and Related Compounds. National Academy Press. Washington, D.C. pp. 95-185. Anonim, 2013. Scientific opinion on dietary reference values for vitamin C. EFSA Panel on Dietetic Products and Nutrition and Allergies [NDA]. EFSA Journal 11(11):3418. Anonim, 2018. FAOSTAT. Food and Agriculture Organisation Database. http://www.fao.org/faostat/en/#data/QC Anonim, 2019. USDA FoodData Central. https://fdc.nal.usda.gov Arellano-Gómez, L.A., Saucedo-Veloz, C., ArévaloGalarza, L. 2005. Biochemical and physiological changes during ripening of black sapote fruit (Diospyros digyna Jacq.). Agrociencia 39: 173-181. Assis, S.A., Pedro Fernanades, F., Martins, A.B.G., Faria Oliveira, O.M.M. 2008. Acerola: importance, culture conditions, production and biochemical aspects. Fruits 63(2):93-101. Bingöl, G. 1977. Vitaminler ve Enzimler. Ankara Üniversitesi Eczacılık Fakültesi Yayınları Ders Kitabı Serisi No:10, Ankara, 88 s. Brandão, T.S.de O., Sena, A.R. de, Teshima, E., David, J.M., Assis, S.A. 2011. Changes in enzymes, phenolic compounds, tannins, and vitamin C in various stages of jambolan (Syzygium cumini Lamark) development. Ciência e Tecnologia de Alimentos Campinas 31(4):849-855. Berg, J.M., Tymoczko, J.L., Stryer, L. 2002. Biochemistry. 5 th Ed. W.H. Freeman, New York, NY, USA. Carr, A.C., Maggini, S. 2017. Vitamin C and immune function. Nutrients 9:1211. Castro, J.C., Madox, J.D., Cobos, M., Imán, S.A. 2018. Myrciaria dubia “Camu Camu” fruit: Health-promoting phytochemicals and functional genomic characteristics. Ch 5, pp. 85-116. In: Breeding and Health Benefits of Fruit and Nut Crops. IntechOpen. Chisnall, M., Macknight, R. 2017. Importance of vitamin C in human health and disease. pp: 491-501. In: Ascorbic Acid in Plant Growth, Development and Stress Tolerance (Eds: M.A. Hossain, S. Munne-Bosch, D.J. Burritt, P. Diaz-Vivancos, M. Fujita, A. Lorence). Springer, 511 p. https://doi.org/10.1007/978-3- 319-74057-7_19 Chirinos, R., Galarza, J., Betalleluz-Pallardel, I., Pedreschi, R., Campos, D. 2010. Antioxidant compounds and antioxidant capacity of Peruvian camu camu (Myrciaria dubia (H.B.K.) McVaugh) fruit at different maturity stages. Food Chemistry 120(4):1019-1024. Conklin, P.L., Saracco, S.A., Norris, S.R., Last, R.L. 2000. Identification of ascorbic acid-deficient Arabidopsis thaliana mutants. Genetics 154(2):847-856. Davey, M.W., Van Montagu, M., Inze, D., Sanmartin, M., Kanellis, A., Smirnoff, N., Benzie, I.J.J., Strain, J.J., Favell, D., Fletcher, J. 2000. Plant ʟ-ascorbic acid: chemistry, function, metabolism, bioavailability and effects of processing. J. Sci. Food Agri. 80(7):825-860. Delva, L., Goodrich Schneider, R. 2013. Acerola (Malpighia emarginata DC): Production, postharvest handling, nutrition, and biological activity. Food Reviews International 29(2):107-126. Dos Santos, W.N.L., Sauthier, M.C.S., Cavalcante, D.D., Benevides, C.M.J., Dias, F.S., Santos, D.C.M.B. 2016. Mineral composition, nutritional properties, total phenolics and flavonoids compounds of the atemoya fruit (Annona squamosa L. x Annona cherimola Mill.) and evaluation using multivariate analysis techniques. Anais da Academia Brasileira de Ciências 88(3):1243-1252. Ergun, M., Çakır, A., Osmanoğlu, A., Özbay, N. 2014. Barbados kirazı (Malpighia emarginata D.C.). Türk Tarım ve Doğa Bilimleri Dergisi 1(2):180-187. Fenech, M., Amaya, I., Valpuesta, V., Botella, M.A. 2019. Vitamin C content in fruits: biosynthesis and regulation. Frontiers in Plant Science 9:2006. Gest, N., Gautier, H., Stevens, R. 2013. Ascorbate as seen though plant evolution: the rise of a successful molecule? Journal of Experimental Botany 64(1):33-53. Hamacek, E.R:, Santos, P.R.G., Cardoso, L.de M., Pinheiro-Sant’Ana. 2013. Nutritional composition of tamarind (Tamarindus indica L.) from the Cerrado of Minas Gerais, Brazil. Fruits 68(5):381-395. Hisar, R. 1946. Sebze ve meyvelerimizde C vitamini miktarının tayini. Türk İjiyen ve Tecrübi Biyoloji Dergisi 6:5-71. Itoo, S., Mitsuco, A., Ishihata, K. 1990. Chemical composition of ascorbic acid in acerola fruit from different production regions depend on degree of maturity and stability by processing. Nippon Shokuhin Kogyu Gakkaishi 37:726- 729. Janick, J., Paull, R.E. 2008. The Encyclopedia of Fruit and Nuts. CABI, Wallingford, OX, UK. Jopp, A. 2014. Hayatın Doğal Mucizeleri VitaminlerRisk Faktörü: Vitamin Eksikliği. Çev: F. Erdoğan. Elma Yayınevi Toplumsal ve Bireysel Gelişim Serisi: 48, Ankara, 214 s. Justi, K.C., Visentainer, J.V., Souze, de N.E., Matsushita, M. 2000. Nutritional composition and vitamin C stability in stored camu-camu (Myrciaria dubia) pulp. Archivos Latinoamericanos de Nutricion 50(4):450-453. Karadeniz, T. 2004. Şifalı Meyveler: Meyvelerle Beslenme ve Tedavi Şekilleri. Burcan Ofset Matbaacılık Sanayii, Ordu, 208 s. Lanza, B., Ninfali, P. 2020. Antioxidants in extra virgin olive oil and table olives: connections between agriculture and processing for health choices. Antioxidants 9:41. Latocha, P., Krupa, T., Wołosiak, R., Worobiej, E., Wilczak, R. 2010. Antioxidant activity and chemical difference in fruit of different Actinidia sp. International Journal of Food Science and Nutrition 61(4):381-394. Lee, S.K., Kader, A.A. 2000. Preharvest and postharvest factors influencing vitamin C content of horticultural crops. Postharvest Biology and Technology 20:207-220. Lim, T.K. 2012. Edible Medicinal and Non Medicinal Plants: Volume 3, Fruits. Springer, pp. 153- 159. Macknight, R.C., Laing, W.A., Bulley, A.M., Broad, R.C., Johnson, A.A.T., Hellens, R.P. 2017. Increasing ascorbate levels in crops to enhance human nutrition and plant abiotic stress tolerance. Current Opinion in Biotechnology 44:153-160. Mellidou, I., Koukounaras, A., Chatzopoulou, F., Kostas, S., Kanellis, A.K. 2018. Plant vitamin C: One single molecule with a plethora of roles. pp. 463, Ch:22, In: Fruit and Vegetable Phytochemicals: Chemistry and Human Health, Vol:1, 2nd Ed. E.M. Yahia (ed.). John Wiley and Sons, Ltd. Mezadri, T., Fernández-Pachón, S., Villaño, D., García-Parilla, M.C., Troncoso, A.M. 2006. El fruto de la acerola: composición y posibles usos alimenticios [Acerola fruit: Composition and possible food uses]. Arch. Latinoam. Nutr. 56(2):101-109 [in Spanish with English abstract]. Morton, J. 1987. Fruits of Warm Climates. Julia F. Morton Publish., Miami, FL, USA. https://hort.purdue.edu/newcrop/morton/index. html Mukhtar, Z.G., Ibrahim, M.S., Ibrahim, Y.I., Karatas, F. 2019. Amounts of vitamin A, vitamin E, vitamin C, β-carotene, lycopene, gherelin, glutathione and MDA in fruits of Diospyros kaki L. GIDA 44(4):585-592. Nakasone, H.Y., Paull, R.E. 1998. Tropical Fruits. BCABI, Wallingford, UK, pp.377-389. 445 p. Nishiyama, I., Yamashita, Y., Yamanaka, M., Shimohashi, A., Fukuda, T., Oota, T. 2004. Varietal difference in vitamin C content in the fruit of kiwifruit and other Actinidia species. Journal of Agriculture and Food Chemistry 52:5472-5475. Okello, J., Okullo, J.B.L., Eilu, G., Nyeko, P., Obua, J. 2018. Physicochemical composition of Tamarindus indica L. (tamarind) fruits in the agro-ecological zones of Uganda. Food Science and Nutrition 6:1179-1189. DOI: 10.1002/fsn3.627 Oliveira, D. da S., Lobato, A.L., Ribeiro, S.M.R., Santana, A.M.C., Chaves, J.B.P., PinheiroSant’Ana, H.M. 2010. Carotenoids and vitamin C during handling and distribution of guava (Psidium guajava L.), mango (Mangifera indica L.), and papaya (Carica papaya L.) at commercial restaurants. Journal of Agricultural Food Chemistry 58:6166-6172. Opara, L., Al-Ani, M.R., Al-Shuaibi, Y.S. 2009. Physico-chemical properties, vitamin C content, and antimicrobial properties of pomegranate fruit (Punica granatum L.). Food and Bioprocess Technology 2:315-321. Özata, M. 2017. Hayat Kurtaran Vitamin ve Mineraller: Bilinçli Kullanım İçin En Güvenilir Rehber. Hayykitap: 267, Hayat Güzeldir:39, İstanbul, 136 s. Özen, M. 2007. İncir Yetiştiriciliği. TAGEM Erbeyli İncir Arş. Ens. Aydın, 145 s. Paiva, J.R., Barros, M., Cavalcanti, J.J.V. 2009. Cashew (Anacadium occidentale L.) breeding: a global pespective. Ch.9, p. 287-324. In: Breeding Plantation Tree Crops: Tropical Species, Eds: S.M. Jain, P.M. Priyadarshan, Springer. Pandey, S., Satpathy, G., Gupta, R.K. 2014. Evaluation of nutritional, phytochemical, antioxidant and antibacterial activity of exotic fruit “Limonia acidissima”. Journal of Pharmacognosy and Phytochemistry 3(2):81- 88. Pommer, C.V., Barbosa, W. 2009. The impact of breeding on fruit production in warm climates of Brazil. Rev. Bras. Frutic., Jaboticabal - SP, 31(2): 612-634. Pommer, C.V., Murakami, K.R.N. 2009. Breeding guava (Psidium guajava L.). Ch.3, p. 83-120. In: Breeding Plantation Tree Crops: Tropical Species, Eds: S.M. Jain, P.M. Priyadarshan, Springer. Pui, L.P., Karim, R., Yusof, Y.A., Wong, C.W., Ghazali, H.M. 2018. Physicochemical and sensory properties of selected ‘cempedak’ (Artocarpus integer L.) fruit varieties. International Food Research Journal 25(2): 861-869. Prakash, A., Baskaran, R. 2018. Acerola, an untapped functional superfruit: a review on latest frontiers. Journal of Food Science and Technology 55(9):3373-3384. Ranasinghe, R.A.S.N., Maduwanthi, S.D.T., Marapana, R.A.U.J. 2019. Nutritional and health benefits of jackfruit (Artocarpus heterophyllus Lam.): a review. International Journal of Food Science 2019:4327183 https://doi.org/10.1155/2019/4327183. Righetto, A.M., Netto, F.M., Carraro, F. 2005. Chemical composition and antioxidant activity of juices from mature and immature acerola (Malpighia emarginata DC). Food Science and Technology International 11:315-321. Salunkhe, D.K., Kadam, S.S. 1995. Handbook of Fruit Science and Technology: Production, Composition, Storage, and Processing. Marcel Dekker, Inc., New York, NY, USA, 611 p. Simpson, M.G. 2019. Plant Systematics. 3rd Ed. Akademic Press, Burlington, MA, USA Smirnoff, N. 1996. The function and metabolism of ascorbic acid in plants. Annuals of Botany 78:661-669. Smirnoff, N. 2018. Ascorbic acid metabolism and function_a comparison of plants and mammals. Free Radical Biology and Medicine 122:116- 129. Smirnoff, N., Conklin, P.L., Loewus, F.A. 2001. Biosynthesis of ascorbic acid in plants: a renaissence. Annu. Rev. Plant Physiol. Plant Mol. Biol. 52:437-467. Santini, R. Jr., Navarez, J. 1955. Extraction of ascorbic acid from acerolas (Malpighia punicifolia L.). J. Agr. U. Puerto Rico 39 (4):184-189. Small, E. 2012. Top 100 Exotic Food Plants. CRC Press, Taylor & Francis, Boca Raton, FL, USA, 637 p. Suekawa, M., Kondo, T., Fujikawa, Y., Esaka, M., 2017. Regulation of ascorbic acid biosynthesis in plants. pp: 157-176. In: Ascorbic Acid in Plant Growth, Development and Stress Tolerance (Eds: M.A. Hossain, S. MunneBosch, D.J. Burritt, P. Diaz-Vivancos, M. Fujita, A. Lorence, A). Springer, 511 p. Sumaryani, N.P., Dharmadewi, A.A.I.M. 2018. Analysis of vitamin c content of red dragon fruit (Hylocereus polyrhizuz) and white dragon fruit (Hylocereus undatus) in storage with different temperatures and times. Jurnal Metamorfosa 2:249-253. Vendramini, A.L., Trugo, L.C. 2000. Chemical composition of acerola fruit (Malpighia punicifolia L.) at three stages of maturity. Food Chemistry 71:195-198. Vísentainer, J.V., Vieira, O., Matsushita, M., Souza, N.E. 1997. Caracterizagáo físico-química da acerola Malpighia glabra L. produzida na regiao de Maringá, Estado do Paraná, Brasil. Archivos LatinoAmericanos de Nutricion 47(1):43-45. Walji, H. 2005. Vitaminler: sağlıklı yaşam için gerekli besinler. Çev: N. Duransoy. Dost Kitabevi, Ankara, 182 s. Wali, V.K., Bakshi, P., Jarotia, A., Bhushan, B., Bakshi, M. 2015. Aonla. SKUAST-Lammu, (J and K), 30 p. Wall, M.M. 2006. Ascorbic acid and mineral composition of longan (Dimocarpus longan), lychee (Litchi chinensis) and rambutan (Nephelium lappaceum) cultivars grown in Hawaii. Journal of Food Composition and Analysis 19:655-663. Yan, S.W., Ramasamy, R., Alitheen, N.B.M., Rahmat, A. 2013. A comparative assessment of nutritional composition, total phenolic, total flavonoid, antioxidant capacity, and antioxidant vitamins of two types of Malaysian underutilized fruits (Averrhoa bilimbi and Averrhoa carambola). International Journal of Foor Properties 16(3):1231-1244. Youssef, M.K.E., El-Manfaloty, M.A., Ali, H.M. 2013. Assessment of proximate chemical composition, nutritional status, fatty acid composition and phenolic compounds of carob (Ceratonia siliqua L.). Food and Public Health 3(6):304-308. Zhang, Y., Zhong, C., Liu, Y., Zhang, Q., Sun, X., Li, D. 2017. Agronomic trait variations and ploidy differentiation of kiwiberries in northwest China: implication for breeding. Frontiers in Plant Science 8: 711.

                Çizelge 1. Taze meyve ve sebzelerdeki vitamin C miktarı (mg/100 g yenilebilir bölüm)

                Table 1. The amount of vitamin C in fresh fruits and vegatables (mg/100 g in edible portion)


                Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
                Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

                Yorum yap

                Hazırlanıyor...
                X