Duyuru

Collapse
No announcement yet.

Gana Kinini, Kriptolepis, Cryptolepis sanguinolenta (Lindl.) Schlt.

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Gana Kinini, Kriptolepis, Cryptolepis sanguinolenta (Lindl.) Schlt.


    Lyme hastalığı tedavisi: 2 bitkisel bileşik antibiyotikleri yenebilir

    Kene ısırığı yoluyla bulaşan Lyme hastalığı, Amerika Birleşik Devletleri ve dünyadaki binlerce insanı etkilemektedir. Şu anda, doktorlar onu tedavi etmek için antibiyotik kullanıyor, ancak bitki bazlı ilaçlar daha etkili olabilir mi? Japon knotweed (yukarıda resmedilmiştir), aktif bileşikleri Lyme hastalığına neden olan bakteriye karşı oldukça etkili görünen iki bitkiden biridir. Lyme hastalığı, Borrelia burgdorferi ( B. burgdorferi ) bakterisinin neden olduğu bulaşıcı bir hastalıktır .

    Hastalık, bakteriyi taşıyan kene ısırığı yoluyla insanlara yayılır ve tahmini olarak 300.000 kişiGüvenilir Kaynak sadece ABD'de her yıl. Şu anda sağlık uzmanları, üç antibiyotik arasından seçim yapıyor. Lyme hastalığı. Bunlar doksisiklin, sefuroksim ve amoksisilindir. Ancak bazen antibiyotikler sistemden B. burgdorferi'nin tüm izlerini yok etmede etkili değildir , bu da hastalığın devam edebileceği anlamına gelir. Bu olduğunda, antibiyotik direnci geliştiren bakteri hücreleri çoğalmaya devam edebilir. Bunlar olarak bilinir. Bu nedenle, araştırmacılar bakteriyle savaşmanın alternatif yollarını araştırıyorlar ve ilk araştırmaları doğal çarelere odaklandı. 2018 yılında, bir in vitro (kültür hücrelerinde).10 bitki kaynaklı uçucu yağın B. burgdorferi ile savaşmaya yardımcı olabileceğini öne sürdü . Şimdi, Baltimore'daki Johns Hopkins Bloomberg Halk Sağlığı Okulu'ndan ve Berkeley'deki California Fonksiyonel Tıp ve Odak Sağlığı Merkezi'nden araştırmacılar, iki belirli bitkinin daha fazlasına yol açabileceğine inanmalarını sağlayan yeni bir çalışma yürüttüler. Lyme hastalığına karşı etkili tedaviler.

    Çalışmanın ortak yazarı Dr. Sunjya Schweig, "Bugün binlerce Lyme hastası, özellikle de etkili bir şekilde tedavi edilmemiş sonraki aşama semptomları olan hastalar, etkili, erişilebilir tedavi seçeneklerine büyük ihtiyaç duyuyor" diyor. Quinine and knotweed show promise Araştırmacılar, bulguları Frontiers in Medicine dergisinde yayınlanan çalışmalarında B. burgdorferi'yi öldürmede 14 farklı bitki özütünün potansiyelini analiz ettiler . Sonuçları Lyme hastalığına karşı kullanılan iki geleneksel ilaçla karşılaştırdılar: doksisiklin ve sefuroksim. Araştırmacılar, bu bitki özlerinin her birini serbest yüzme (planktonik) B. burgdorferi Bu bakteri - bakteri hücrelerinin kümeleri. İn vitro testler, yedi farklı bitkiden elde edilen özlerin, Lyme hastalığı bakterilerine karşı doksisiklin ve sefuroksime göre daha etkili olduğunu gösterdi. Söz konusu bitkiler siyah ceviz ( Juglans nigra ), kedi pençesi ( Uncaria tomentosa ), tatlı pelin ( Artemisia annua ), Akdeniz kaya gülü ( Cistus incanus ), Çin takke ( Scutellaria baicalensis ), Ganalı kinin ( Cryptolepis sanguinolenta ) ve Japon knotwenta idi. ( Polygonum cuspidatum ).

    Araştırmacılar, B. burgdorferi'ye yönelik en yüksek antibakteriyel aktiviteye sahip olanların Ganalı kinin ve Japon budama otu olduğunu belirtiyorlar.

    Ganalı kininindeki aktif bileşen , insanların geleneksel olarak sıtma, hepatit, septisemi ve tüberküloza karşı kullandıkları kriptolepin adı verilen bir alkaloiddir . Japon knotweed, adı verilen bir antioksidan içerir. ResveratrolGüvenilir Kaynak. Bazı çalışmalar, resveratrolün antikanser özelliklere sahip olabileceğini ve kalp ve beyin sağlığını koruyabileceğini ileri sürdü. “Bu çalışma, Cryptolepis, kara ceviz, tatlı pelin, kedi pençesi ve Japon knotweed gibi hastalar tarafından kullanılan bazı bitkilerin Lyme hastalığı bakterilerine, özellikle uykuda olan persister formlara karşı güçlü aktiviteye sahip olduğuna dair ilk ikna edici kanıtı sağlıyor. mevcut Lyme antibiyotikleri tarafından öldürülmedi ”diyor çalışmanın ortak yazarı Prof. Ying Zhang. TIBBİ HABERLER BUGÜN HABER BÜLTENİ
    Bilgi Güçtür. Ücretsiz günlük bültenimizi alın. En çok ilgilendiğiniz sağlık konularını daha derinlemesine inceleyin. İlk gerçekler bültenimize bugün abone olun.

    Kişisel gizlilik bizim için önemlidir 1-week treatment eradicates bacteria Bu çalışmada, bilim adamları, Ganalı kinin ve Japon düğüm otundan elde edilen özlerin, laboratuvar yemeklerinde düşük konsantrasyonlarda -% 0,03-0,5 - mevcut olduklarında bile serbest yüzen bakterilerin çoğalmasını engellediğini gözlemlediler. İki bitki özü ayrıca Lyme hastalığına neden olan bakterinin tüm mikro kolonilerini de öldürdü.

    Aslında,% 1 Ganalı kinin özütü ile 7 günlük tek bir tedavi, bakteriyi laboratuar tabaklarında yok edebildi. Dahası, bakteri bu tedaviden sonra geri dönüş yapamadı.

    Aynı zamanda, araştırmacıların test ettiği diğer bazı doğal bileşikler önemsiz sonuç verdi veya hiç sonuç vermedi. Greyfurt çekirdeği, yeşil chiretta ( Andrographis paniculata ), ashwagandha , stevia, fuller's teasel ( Dipsacus fullonum ) ve Japon çayelinden elde edilen ekstrelerde durum böyleydi . Araştırmacılar ayrıca, anekdot kanıtlarının Lyme hastalığına karşı etkili olabileceğini gösteren diğer bazı maddeleri de test ettiler. Bunlar kolloidal gümüş, monogliserid monolaurin ve antimikrobiyal peptit LL37 idi - ayrıca insan bağışıklık hücrelerini buldu. Bu maddelerin hiçbirinin B. burgdorferi üzerinde önemli bir etkisi yoktur . Mevcut bulgular, birçok bitkinin Lyme hastalığının tedavisinde umut vaat ettiğini gösterse de, araştırmacılar, doğal ilaçların etkinliğini ve güvenliğini doğrulamak için hayvanlarda ve insanlarda yapılan çalışmaların hala gerekli olduğu konusunda uyarıyorlar.
    “Hastalar ve doktorları ek tedavi seçenekleri olarak giderek artan bir şekilde bitkisel ilaçlara yöneliyorlar ve bu bulguların bu tedavileri daha iyi anlamaya giden yolu göstermeye yardımcı olacağını umuyoruz. Ancak Lyme hastalığı hastalarının etkili tedavisi için kanıt oluşturmak için daha fazla preklinik çalışmalar ve klinik araştırmalar gerekecek. "

    - Ortak yazar Jacob Leone, Ph.D.


    Ortak yazar Jacob Leone, Ph.D. de potansiyel çıkar çatışmalarını kabul ediyor ve "kene kaynaklı hastalara tedavi [sağlayan] FOCUS Health Group ve Door One Concierge olmak üzere iki naturopatik tıbbi uygulamanın sahibi olduğunu belirtiyor. hastalıklar."

  • #2
    Bu mucize kök, Herbal Antibiotics'in yazarı olan şifalı bitki uzmanı Stephen Harrod Buhner'e göre en etkili sistemik bitkisel antibiyotiklerden biridir . Kök, sıtma parazitlerinin dirençli türlerine karşı oldukça etkili olduğu gösterilen güçlü bir antimalaryal olan kriptolepin içerir. Ancak sadece bir anti-sıtma değil, aynı zamanda MRSA, streptococcus, babesia, idrar yolu enfeksiyonları, tüberküloz, salmonella, shigella, bel soğukluğu ve diğer bakteriyel enfeksiyonlar için en iyi antibakteriyellerden biridir. Genellikle farmasötik ilaçlardan daha etkili olduğu kanıtlanır. Ganalı kinin olarak bilinen kök, Afrika'da sıtma , ateş ve ishal için uzun bir kullanım geçmişine sahiptir ve dünyanın geri kalanı yavaş yavaş bu harika bitkiye uyanmaktadır.

    Kökler çay veya toz halinde alınabilir ve kapsüllerde alınabilir. Ancak onu almanın en yaygın yolu bir tentür olarak kullanmaktır. Bitkisel tentürlerin yapımı kolaydır ve yıllarca saklanacaktır. Genellikle kurumuş kökler geniş ağızlı bir kavanoza yerleştirilir ve üzerlerini örtecek kadar votka veya cin dökülür. Köklerin aktif bileşenlerinin tam olarak çıkarılmasını sağlamak için karışım birkaç günde bir çalkalanır. Üç ay sonra sıvı süzülür ve koyu renkli bir şişeye dökülür ve sıkıca kapatılır. Tentür artık enfeksiyonları tedavi etmek için kullanıma hazırdır. Stephen Buhner'ın videoda dediği gibi, Cryptolepis "çok güçlüdür ve hiçbir yan etkisi yoktur." Ve etkinliklerini artırmak için antibiyotik ilaçları tamamlayabilir.

    Yorum yap


    • #3
      Cryptolepis sanguinolenta (Lindl.) Schlt.

      JN Amissah, D. Osei-Safo, CM Asare, . Missah-Assihene, Danquah, I. Addae-Mensah https://doi.org/10.5897/JMPR2015.5793ÖZ

      Cryptolepis sanguinolenta(Lindl.) Schlt. Gana'da sıtma tedavisinde kullanılan popüler bir şifalı bitki türüdür. Bu türe olan yoğun talebe rağmen, hasat yalnızca vahşi doğadan yapılır ve bu da popülasyonların azalmasına neden olur. Yetiştiriciliği için evcilleştirme protokolleri geliştirmeye yönelik devam eden araştırmanın bir parçası olarak, bir kırpma döngüsü geliştirmek ve dikme ve bitki yaşının bitki büyümesi ve köklerdeki aktif bileşen (kriptolepin) konsantrasyonu üzerindeki etkisini belirlemek için bir saha çalışması yapıldı. Staking, kök kuru ağırlığı üzerinde önemli bir etkiye sahip değildi, ancak muhtemelen daha iyi çiçek konumlandırmasından kaynaklanan tohum kabuklarının üretimi için önemliydi. En yüksek kriptolepin konsantrasyonu (ortalama 1.84 mg / 100 mg kök materyali), ekimden 289 gün sonra (DAP) tepe ortalama kök kuru ağırlığı (52.8 g) ile çakışmıştır, kök hasadı için en ideal zamanı belirtir. İlginç bir şekilde, deneyin başlamasından önce fidelerdeki kriptolepin içeriği (1.82 mg / 100 mg), bulunan konsantrasyon olan 289 DAP (1.84 mg / 100 mg) ile karşılaştırılabilirdi. İlk 105 DAP, düşük kök kuru ağırlığı verimleri (13.5 g) ve ardından kök kuru ağırlığının 289 DAP'ye kadar neredeyse doğrusal olarak arttığı hızlı bir büyüme dönemi ile karakterize edildi. Deney döneminin sonlarına doğru asmalara ayrılan kuru madde artmasına rağmen (% 60), köklere ayrılan kuru madde deney dönemi boyunca oldukça sabit (% 30) kalmıştır. İlk 105 DAP, düşük kök kuru ağırlığı verimleri (13.5 g) ve ardından kök kuru ağırlığının 289 DAP'ye kadar neredeyse doğrusal olarak arttığı hızlı bir büyüme dönemi ile karakterize edildi. Deney döneminin sonlarına doğru asmalara ayrılan kuru madde artmasına rağmen (% 60), köklere ayrılan kuru madde deney dönemi boyunca oldukça sabit (% 30) kalmıştır. İlk 105 DAP, düşük kök kuru ağırlığı verimleri (13.5 g) ve ardından kök kuru ağırlığının 289 DAP'ye kadar neredeyse doğrusal olarak arttığı hızlı bir büyüme dönemi ile karakterize edildi. Deney döneminin sonlarına doğru asmalara ayrılan kuru madde artmasına rağmen (% 60), köklere ayrılan kuru madde deney dönemi boyunca oldukça sabit (% 30) kalmıştır.

      Anahtar kelimeler: Yetiştirme, Cryptolepis sanguinolenta , cryptolepine, evcilleştirme, sıtma, yabani hasat.

      GİRİŞ

      Gana, diğer gelişmekte olan ülkeler gibi, çok çeşitli tıbbi bitki türlerine ev sahipliği yapmaktadır. Gelişmekte olan ülkelerdeki nüfusun ~% 80'inin birincil sağlık ihtiyaçlarını karşılamak için yerli tıbbi bitki türlerine bağlı olduğu tahmin edilmektedir (Cunningham, 1993). Gana bugün şifalı bitki sanayi, onun üretim ve hammadde toplama sektörlerinde olanlara önemli bir gelir kaynağı olarak hizmet eder (Ofori vd . , 2012). Bu nedenle şifalı bitkiler, yalnızca halkın sağlık hizmeti ihtiyaçlarının karşılanmasında önemli bir rol oynamakla kalmaz, aynı zamanda Gana gibi gelişmekte olan ekonomilerin ekonomik büyümesinde de önemlidir.

      Bu yerli tıbbi bitki türlerinin birçoğunun sıtmanın tedavisinde etkili olduğu kanıtlanmıştır. Dünya Sağlık Örgütü (WHO, 2012) Dünya Sıtma raporuna göre, 2010 yılında 219 milyon sıtma vakasının rapor edildiğini ve bunun 660.000 sıtma ölümüne yol açtığını gösteriyor. Allopatik ilaçların hemen bulunamadığı topluluklar için, bitkisel tedavi genellikle tek çare kaynağıdır.

      Cryptolepis sanguinolenta (Lindl.) Schlt. Gana'da uzun süredir sıtma tedavisinde kullanılan önemli bir tıbbi bitkidir. Periplocaceae ailesine aittir, ancak bazen Apocynaceae ailesi altında sınıflandırılır. Santral, Batı'da ve Orta Afrika alt bölgesinin bazı bölgelerinde Senegal, Nijerya, Kamerun, Orta Afrika Cumhuriyeti, Kongo, DR gibi ülkelerde sınırlı dağıtıma sahiptir. Kongo, Uganda ve Angola (Jansen ve Schmelzer, 2010).

      Gana'da bitki esas olarak Akwapim ve Kwahu sıradağlarının yamaçlarında bulunur ve ayrıca Gana'nın Volta, Orta ve Batı bölgelerinde de bulunabilir (Willcox ve diğerleri, 2004). Geleneksel şifacılar tarafından yaygın olarak kullanılmaktadır ve Gana'da piyasada satılan Class Malacure, Herbaquine, Nibima, Phyto-Laria ve Malaherb gibi bir dizi bitkisel ürüne dahil edilmiştir. Köklerin sulu bir ekstraktı, indolokinolin alkaloidlerini, özellikle de kindolinin bir N-metil türevi olan kriptolepini (Şekil 1) verir (Dwuma-Badu, 1978; Tachie ve diğerleri, 1991, 1993). Çeşitli küçük alkaloidler arasında 11-hidroksikriptolepin, kriptoheptin, izokriptolepin (Cryptosanguinolentin), neo cryptolepine, cryptoq uindoline, quindoline, quindolinone, biscryptolepine ve cryptospirolepine izole edilmiştir (Tackarafie et al., 1993; Sharafie et al., 1993;

      Bu alkaloidlerin anti-mikrobiyal (Sawer ve diğerleri, 2005), anti-hiperglisemik (Luo ve diğerleri, 1998; Bierer ve diğerleri, 1998) ve anti-sıtma (Tempesta, 2010; Bugyei ve diğerleri. , 2010; Ansah ve diğerleri, 2005) özellikleri. Bugyei ve arkadaşları tarafından 11 ila 50 yaşları arasındaki hastalar üzerinde yapılan bir klinik çalışma. (2010), akut sıtma tedavisinde C. sanguinolenta köklerinden yapılan bir çay poşeti formülasyonunun etkinliğini kanıtlamıştır . Daha önceki çalışmalar, C. sanguinolenta'dan izole edilen alkaloidlerin , sıtma parazitinin klorokin dirençli suşlarına karşı etkili olduğunu göstermiştir (Wright ve diğerleri, 1996; Cimanga ve diğerleri, 1997; Kirby ve diğerleri, 1995).

      C. sanguinolenta'nın sürdürülebilir olmayan yollarla (kökleri istenen ürünler olduğu için) yaygın kullanımı ve yabani hasadı , sürdürülebilir yönetimini ve yetiştirme yoluyla korunmasını gerektirir. Arzlarına yönelik tehdit, çiftçilik faaliyetleri için orman temizliği ile daha da artmaktadır. C. sanguinolenta için güvenilir ve sabit bir bitki materyali kaynağı sağlamak ve böylece yabani popülasyonu doğal ortamlarında korumak için hızlı ve benimsenmesi kolay yetiştirme ve çoğaltma tekniklerine ihtiyaç vardır .

      Alkaloidler gibi ikincil metabolitlerin üretimi genetik olarak kontrol edilmesine rağmen, çevresel koşullar bu ikincil metabolitlerin büyümesinde, oluşumunda ve kalitesinde önemli rol oynar (Li, 2000). Işık yoğunluğu gibi çevresel koşullar, bitkilerin yapraklarının güneş ışığına ve havalandırmaya daha iyi maruz kalmasını sağlamak ve böylece bitkinin fotosentetik kapasitesini arttırmak için kullanılan eski bir kültürel uygulama olan staking'den etkilenebilir (Norman, 1992). Staking'in, Dioscorea bitkilerinde yumru veriminde, stake edilmemiş bitkilere kıyasla iki buçuk kat artışa neden olduğu bildirilmiştir (Kurian ve Sankar, 2007). Singh vd. (1996), Dioscorea yumrularının stake edilmesi ile yumru verimi ve diosgenin içeriğinde (önemli bir steroid ilaç öncüsü) önemli bir artış gözlemledi.

      Bu çalışmanın amacı, mahsul döngüsünü belirlemek ve bir yıllık süre boyunca bitki büyüme parametreleri ve kriptolepin konsantrasyonu (aktif bileşen) üzerindeki stake etmenin etkisini değerlendirmekti. Bu araştırma, C. sanguinolenta'nın yetiştirilmesi için evcilleştirme protokolleri geliştirmeye yönelik bir dizi deneyin parçasını oluşturmaktadır .


      MALZEMELER VE YÖNTEMLER


      Site koşulları

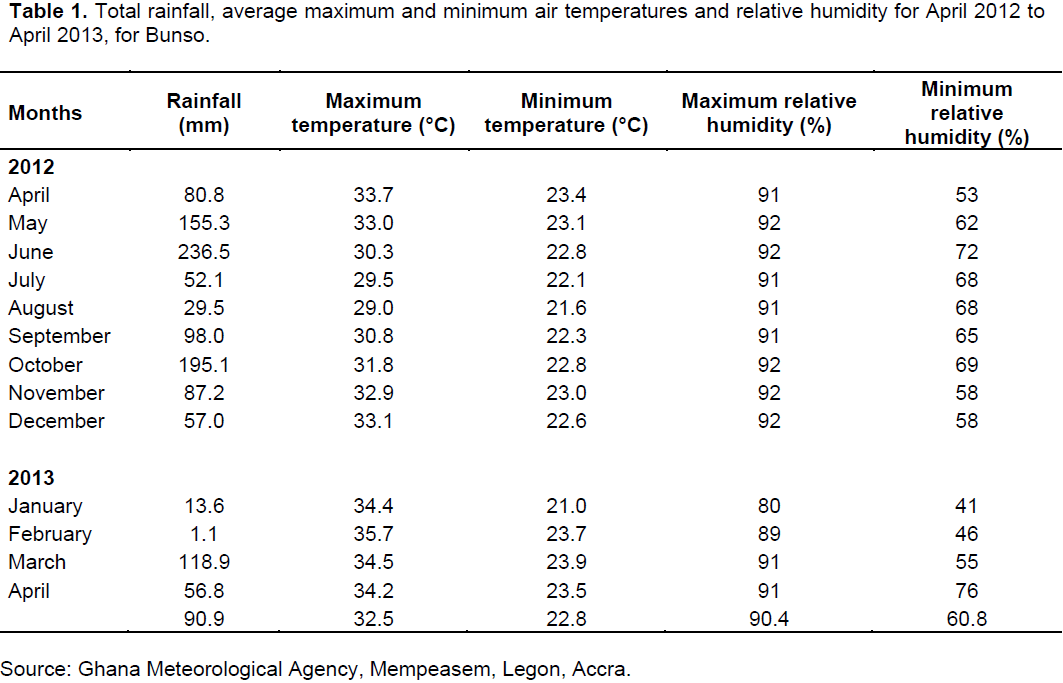
      Bitki Genetik Kaynakları Araştırma Enstitüsü'nün Gana'nın doğu bölgesindeki Bunso'daki deneysel arazilerinde Nisan 2012'den Nisan 2013'e kadar bir saha deneyi gerçekleştirildi. Verilen süre boyunca Bunso'daki ortalama yağış, Haziran ayında en yüksek oldu. 2012 (236,5 mm) ve en düşük Şubat 2013 (1,1 mm). Tablo 1 deneysel dönem boyunca Bunso'daki maksimum ve minimum hava sıcaklıklarını, ortalama aylık yağış miktarını ve maksimum ve minimum bağıl nemi göstermektedir. Deney sahasının toprağı, pH 5,8, organik madde% 3,1, N:% 0,10, P: 32,4 mg / kg, K: 0,2 cmol / kg, Na: 0,4 cmol / kg, Ca: 11,6 cmol ile dokulu kumlu balçıktı. / kg, Mg: 3.6 cmol / kg ve CEC 25.6 cmol / kg, 0 ila 15 cm toprak derinliğinde.

      Bitki ve yetiştirme / saha hazırlığı

      C. sanguinolenta tohumları Şubat 2012'de fidanlık yataklarına ekilmiş ve ilk yağıştan sonra (tohumların fidanlıkta ekilmesinden 74 gün sonra) Nisan ayında tarlaya ekilmiştir. 60 m × 12 m'lik bir arazi temizlendi ve eşit büyüklükte üç parsele bölündü. Her arsa ayrıca ikiye bölündü ve rastgele olarak kazıklanmış veya oylanmamış muameleye atandı. Tedaviler üç kez tekrarlandı. Her parselde altmış dört höyük oluşturuldu. Toplamda 192 adet C. sanguinolenta fidanı dikildi. 24 ila 36 cm yüksekliğindeki höyükler arasındaki boşluk 80 x 80 cm idi.

      Kriptolepin konsantrasyon analizi için deneyin başlangıcında on beş (15) fide rastgele seçildi. Nakledilen fidelere tarlaya yerleşmeleri için 14 gün süre verildi, ardından otuz bitki hasat edildi (5 bitki / tekrar / muamele), her bir örnekleme tarihinde ekimden 105, 197, 289 ve 379 gün sonra (DAP).

      Staking Gliricidia sepium kullanılarak yapıldı. Ayda bir kez ayıklama gibi kültürel uygulamalar yapılıyordu. Fidelerin tarlaya düzgün bir şekilde yerleşmesini sağlamak için dikimden sonraki ilk iki hafta boyunca sulama yapılmıştır.

      Deneysel tasarım ve veri toplama

      Deney tamamen rastgele bir tasarıma (CRD) yerleştirildi. 30 × 4 m boyutundaki her deneysel parsel, her sıra içinde otuz iki bitki / işleme / deneysel birimi temsil eden sekiz bitki içeren dört sıra içeriyordu. Toplam tarla boyutu 60 × 12 m ve toplam 192 bitkidir. Deney sahasının dış çevresindeki bitkiler, bir sınır sırası olarak görev yaptı ve kayıt bitkileri olarak kullanılmadı. Aşağıdaki üreme parametreleri üzerine gözlemler kaydedildi: dikimden çiçeklenmeye kadar geçen gün sayısı, bakla seti ve kapsül olgunlaşması. Veriler ayrıca aşağıdaki bitkisel parametreler hakkında da alındı: bitki başına toplam asma sayısı, ortalama asma çevresi (bir çift kaplama kaliperi kullanılarak santimetre cinsinden ölçüldü), taze bitki ağırlığı (hasat edilen bitkiler yapraklara, gövdelere ve köklere ayrıldı ve tartıldı), bitki kuru maddesi, koparılmış yaprakların ve gövdelerin 70 ° C'de 48 saat boyunca sabit ağırlığa fırında kurutulmasıyla belirlenmiştir. Kökler, sabit bir ağırlığa ve zemine bir ay boyunca havada kurutuldu. Çeşitli bitki dokularında biriken toplam kuru maddenin kuru madde bölümleme oranı şu formül kullanılarak hesaplandı: kuru madde oranı (DMR) = (DMt ) / TDM p

      × 1; DM t ve TDM p , belirli bir hasat tarihi için sırasıyla dokudaki kuru madde ve bitkideki toplam kuru maddedir.

      Kimyasal analiz

      Toz numuneler, aktif bileşen (kriptolepin) konsantrasyonunu belirlemek için analiz edildi. Taze ve kuru ağırlık belirlemede kullanılan on beş bitkiden, kriptolepin içeriğinin belirlenmesi için bitki yaşı başına işlem başına üç bitki bir kenara bırakıldı.

      Cryptolepine için yüksek performanslı sıvı kromatografi (HPLC) testi

      Kriptoplepin referans standardının 100 ppm veya 0.1 mg / ml'lik bir çözeltisi, 0.5 mg referans standardının hassas bir şekilde tartılması ve 5 ml mutlak etanol içerisinde çözündürülmesiyle hazırlandı. Standart standart çözeltiden 1, 5, 10 ve 50 ppm konsantrasyonlu standart çözeltiler hazırlandı. Bu çözümler HPLC'de çalıştırıldı. Her standart çözelti için eğri altındaki alan (AUC), deneyden elde edilen kromatogramdan hesaplandı. Her konsantrasyon için altı kopya elde edildi. Daha sonra her konsantrasyon için ortalama AUC hesaplandı.

      Bir kalibrasyon eğrisi elde etmek için ppm cinsinden konsantrasyona (Cmax) karşı ortalama AUC grafiği çizildi. Eğim (m), y kesme noktası (b) ve korelasyon katsayısı (r 2= 0.9999) Microsoft Excel 2010 kullanılarak hesaplandı. Düz bir çizginin denklemi daha sonra çıkarıldı, AUC = mC + b. Ham özler, 100 mg her bitki materyalinin etanol (50 ml x 24 saat x 3) içinde maserasyonu ve ardından döner buharlaştırıcı kullanılarak kuruyana kadar konsantre edilerek elde edildi. Her kalıntı 20 ml etanol içinde yeniden oluşturuldu ve 4 ° C'de buzdolabında bir reaktif şişesinde tutuldu. her ham özütün (test çözeltisi) bir mililitresi, şişelere yerleştirildi ve oda sıcaklığına ulaşıldıktan sonra HPLC makinesinin otomatik örnekleyicisine yüklendi. Her test solüsyonundan yirmi mikrolitre enjekte edildi ve her biri için altı çalışma yapıldı. Kromatogramlar elde edildi ve her pik için AUC belirlendi. AUC'lerin ortalaması hesaplandı ve kalibrasyon eğrisinden elde edilen düz çizginin denklemi kullanılarak,

      HPLC analizi, Gana Standartlar Kurumu, Accra, Gana'da bir Varian Prostar 410 otomatik örnekleyici, Varian Prostar 220/230/240 pompalar ve 335 model Diode Array Detector (DAD) ile donatılmış bir Varian 920-LC model sıvı kromatografı ile gerçekleştirildi. ) ve veri toplama ve işleme için Galaxie yazılımı. Ters fazlı HPLC yöntemi kullanıldı. Analizler, izokratik bir elüsyon modunda, bir mobil faz olarak dikloroasetik asit (DCA) ile pH 2.4'e modifiye edilmiş metanol: su (90: 9) ve bir Pursuit C18 (5 um partikül boyutu) kolon (250 × 4.6 mm id; Varian; Kat. no. 1215-9307). DAD saptama dalga boyu 366 nm'de izlendi (Şekil 1).


      istatistiksel analiz

      Veriler GENSTAT tarafından sürüm 9 kullanılarak analiz edildi. Varyans analizi (ANOVA) ve ortalamalar arasındaki farklar, en küçük kare farkı kullanılarak p≤0.05'te anlamlılık için belirlendi.

      Genel gözlemler

      Bir ön deneyde, olgun baklalardan elde edilen tohumların en iyi (% 68) çimlendiği, ardından yarı olgun baklalardan gelen tohumların (% 28) ve yeşil olgunlaşmamış baklalardan hiç çimlenme olmadığı (% 0) bulundu. Ekimden ortalama 18 gün sonra çimlenme meydana geldi.

      Cyme tipi çiçekler, Temmuz 105 DAP'ta gözlendi, bu sırada bitkilerin yaklaşık% 70'i çiçekti (Şekil 2). Çiçeklenme, istiflenmemiş bitkilerde, istiflenmiş olanlara kıyasla daha belirgindi. Çiftli doğrusal yayılan foliküller şeklindeki meyveler Ekim 197 DAP'ta öne çıktı (Şekil 3). Meyve vermenin zirvesinde, sırıklanmış bitkiler, sırık olmayan bitkilerden daha fazla bakla üretti; staklanmış bitki başına yaklaşık 80 ila 100 bakla sayılmıştır.


      Daha fazla çiçek ürettikleri için, istiflenmemiş bitkilerin daha fazla bakla üretmesi bekleniyordu. Bununla birlikte, sırıklanmış bitkilerdeki çiçeklerin daha iyi konumlandırılmasının veya tozlaşmanın gerçekleşmesi için açıkta kalmasının bir sonucu olabilen bunun tersi gözlemlendi. C. sanguinolenta'nın üretimi için istiflenmiş bitkilerin tohum üretimi için bir kenara bırakılması tavsiye edilir . Olgun baklalar, bakla başına ortalama 30 tohum içeriyordu. Tohumlar yaklaşık olarak 11 mm uzunluğundaydı ve her bir tohumun sonunda ipeksi tüyler vardı (Şekil 4). Kabuklar, gelişimin ilk aşamalarında koyu yeşilden soluk yeşile, ardından koyu kahverengiye ve son olarak da kabuklar yanlarında uzunlamasına bölünmeden hemen önce soluk kahverengiye doğru ilerledi.


      Maksimum çimlenme elde etmek için, tohumlar iyi saklanmadığı ve bu süreden sonra çimlenme kabiliyetini yitirdiği için, olgun baklalardan alınan tohumlar hasadın ardından iki hafta içinde ekilmelidir.

      Ocak 289 DAP'a kadar bitkiler kuru harmattan havaya tepki olarak yapraklarının yaklaşık% 90'ını kaybetmişlerdir (yüksek gündüz sıcaklıkları, düşük bağıl nem ve aşırı düşük yağış modelleri ile karakterizedir) (Tablo 1). Yaprak kaybı, istiflenmiş bitkilerde, istiflenmemiş bitkilerden daha belirgindi. Kapsüllerin çoğu, Ocak 289 DAP'a kadar olgunlaşmış ve bir tutam saç ile karakterize edilen tohumları ortaya çıkarmak için bölünmüştü. Bitkiler yapraklarının yaklaşık% 70'ini Nisan ayına kadar (379 DAP) geri kazandılar ve yaprakların mevcudiyeti, istiflenmemiş bitkilerde dikenli bitkilerden daha belirgindi. Nisan 379 DAP'ta çiçek veya bakla gözlenmedi.

      Deneyin sonunda bitkinin kök mimarisi, belirgin bir ana kök sisteminden, kök kılları olmayan kalınlaştırılmış çok köklü bir sisteme dönüştü (Şekil 5). Deney döneminde herhangi bir zararlı veya hastalık problemi ile karşılaşılmadı. Şekil 6'da gösterilen mahsul döngüsüne dayanarak, C. sanguinolenta'nın ekonomik verimi olan köklerin , 3 aylık bir süre zarfında tohum ekimini kademeli hale getirerek bir mahsul döngüsünde (Kasım, Aralık ve Ocak) üç kez hasat edilebileceği önerilmektedir. (Şubat, Mart ve Nisan). Tohum ekiminin kademeli olarak yapılması, büyüme dönemi boyunca sürekli hasada izin verecek ve böylece doğadan hasat sıklığının azaltılmasına yardımcı olacaktır.


      SONUÇLAR VE TARTIŞMA


      Bu çalışmada, şu anda yalnızca vahşi doğadan hasat edilen C. sanguinolenta'nın evcilleştirilmesi için yetiştirme protokolleri geliştirmeye ve bitkinin köklerinde cryptolepine (ana aktif bileşen) konsantrasyonunun ne zaman zirvede olduğunu belirlemeye çalıştık.

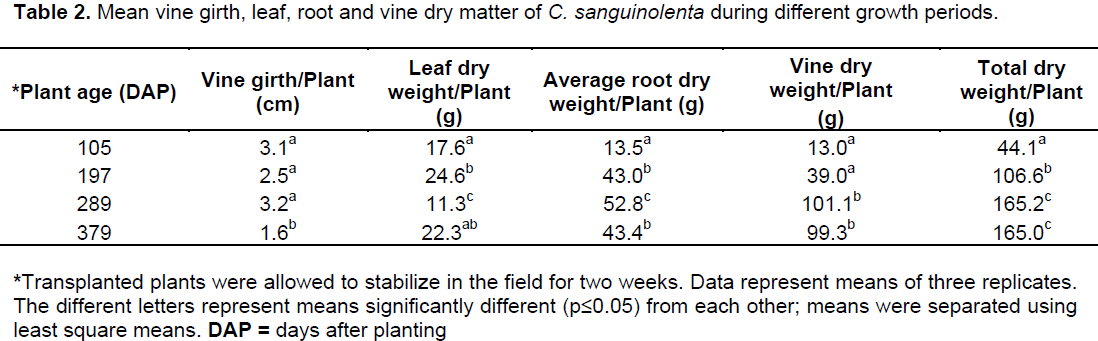
      Emek yoğun olma eğiliminde olan kültürel stake etme pratiğinin, incelenen büyüme parametreleri üzerinde önemli bir etkisi olmamıştır. Bununla birlikte, bitki yaşı, incelenen bitki büyüme parametreleri (asma çevresi, yaprak, kök ve asma kuru ağırlıkları) üzerinde önemli bir etki göstermiştir (Tablo 2). Asma çevresi 289 DAP periyodu boyunca önemli ölçüde değişmedi, ancak 379 DAP'de çevredeki (1.6 cm) önemli bir azalma gözlendi. Asma çevresi 379 DAP'deki bu azalma, Şubat ayına kadar süren Harmattan mevsimi 289 DAP (Ocak ayında) boyunca toplam yaprak sayısındaki azalma dikkate alındığında fotosentetik aktivitedeki azalmanın bir sonucu olabilir (Tablo 1). Yaprak kuru ağırlığındaki azalma (11.3 g) 289 DAP, asmaların yapraklarının ~% 90'ını kaybettiği kuru Harmattan mevsimi ile aynı zamana denk geldi.


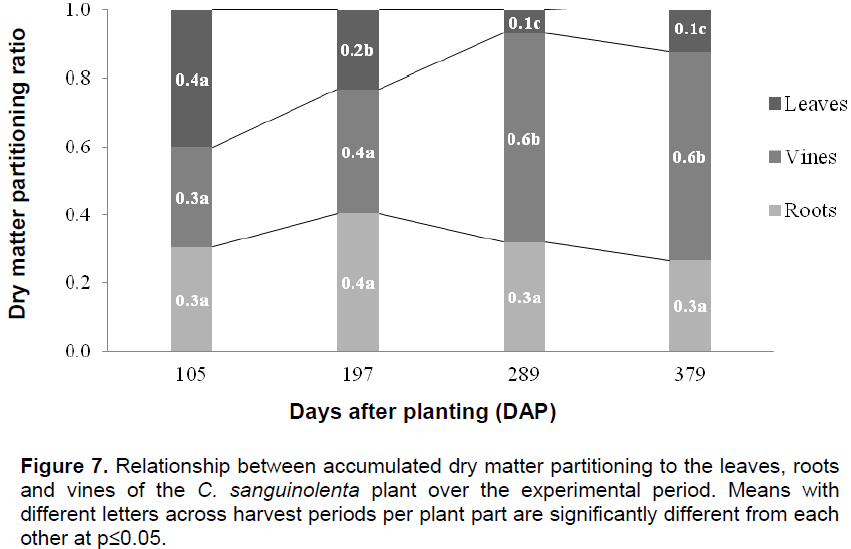
      Bitki başına kök kuru ağırlığının en yüksek (52,8 g) 289 DAP olduğu bulunmuştur (Tablo 2), bu da maksimum ekonomik kazanç için köklerin hasat edilmesi için en ideal zamanı önermektedir. 289 DAP dönemi boyunca toplam kuru ağırlık birikimi, 289 ve 379 DAP dönemi arasında çok küçük bir değişiklik ile doğrusal olarak artmıştır. Bitki bölümlerinde kuru madde bölümlenmesi, bitkinin büyüme ve gelişme aşamaları tarafından tanımlanan ve büyüme ortamından etkilenen ihtiyaca göredir (Singh vd., 2008). Toplam kuru madde, 289 DAP'ta olgunlaşana kadar büyüme döneminde doğrusal olarak artmıştır (Tablo 2). DAP olarak tanımlanan ardışık büyüme dönemlerinde biriken kuru maddenin yapraklara, köklere ve asmalara oranı Şekil 7'de gösterilmektedir. En yüksek çiçeklenme dönemi (üreme aşaması) ile çakışan 105 DAP'de, bitki yapraklara (% 40), köklere (% 30) ve asmalara (% 30) oldukça eşit miktarda kuru madde ayırmıştır. Sonraki hasatlarda yapraklara, asmalara ve köklere ayrılan kuru madde sırasıyla azalmış, artmış ve sabit kalmıştır. Zirve kabuk oluşumu dönemine denk gelen 197 DAP'ta, eşit miktarlarda kuru madde (% 40) asmalara ve köklere bölünürken, yapraklarınki azalmıştır (% 20). 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımıyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. kökler (% 30) ve asmalar (% 30). Sonraki hasatlarda yapraklara, asmalara ve köklere ayrılan kuru madde sırasıyla azalmış, artmış ve sabit kalmıştır. Zirve pod oluşumu dönemine denk gelen 197 DAP'ta, eşit miktarlarda kuru madde (% 40) asmalara ve köklere bölünürken, yapraklarda azalma (% 20) olmuştur. 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımıyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. kökler (% 30) ve asmalar (% 30). Sonraki hasatlarda yapraklara, asmalara ve köklere ayrılan kuru madde sırasıyla azalmış, artmış ve sabit kalmıştır. Zirve kabuk oluşumu dönemine denk gelen 197 DAP'ta, eşit miktarlarda kuru madde (% 40) asmalara ve köklere bölünürken, yapraklarınki azalmıştır (% 20). 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımı yoluyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. sırasıyla artmış ve sabit kalmıştır. Zirve kabuk oluşumu dönemine denk gelen 197 DAP'ta, eşit miktarlarda kuru madde (% 40) asmalara ve köklere bölünürken, yapraklarınki azalmıştır (% 20). 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımı yoluyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. sırasıyla artmış ve sabit kalmıştır. Zirve pod oluşumu dönemine denk gelen 197 DAP'ta, eşit miktarlarda kuru madde (% 40) asmalara ve köklere bölünürken, yapraklarınki azaldı (% 20). 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımıyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde bölünmesi daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımıyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir. 289 DAP'ta asmalara ayrılma lehine, harmattan döneminde yapraklara kuru madde ayrışması daha da azalmıştır. Gözlenen kuru madde bölme eğilimleri, bitkinin dağıtım sistemine ışık tutmaktadır ve kök gelişimini destekleyen gübrelerin kullanımıyla köklere kuru madde bölme verimliliğini artırmanın yollarını bilgilendirmeye hizmet edebilir.


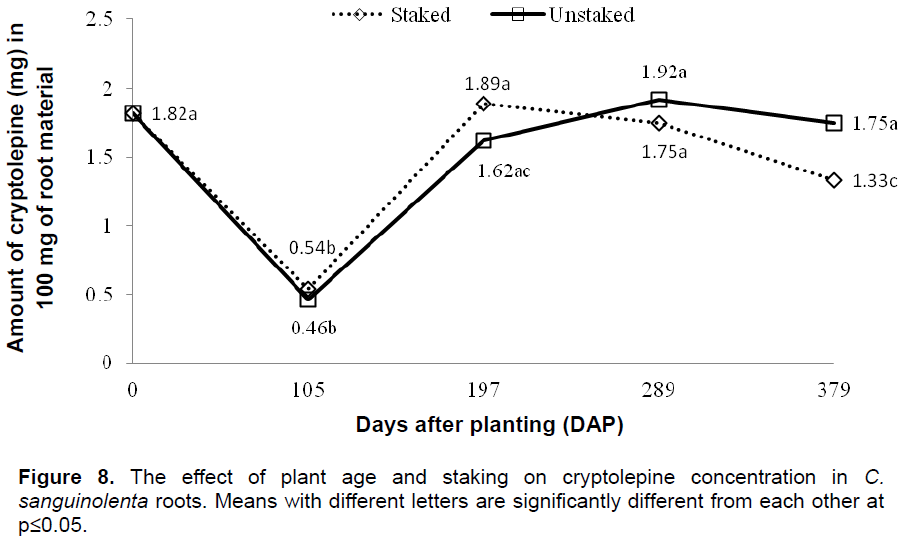
      C. sanguinolenta'nın köklerindeki kriptolepin konsantrasyonunu etkileyen muameleler (stake veya stake yok) ile bitki yaşı arasında önemli bir etkileşim bulundu .. İlginç bir şekilde, kriptolepin konsantrasyonunun, deneyin başlangıcında (1.82 mg / 100 mg) fide bitkilerinde en yüksek olduğu bulundu ve daha sonra hem stakte (0.54 mg / 100 mg) hem de stak edilmemiş (0.46 mg / 100) 105 DAP ile keskin bir şekilde düştü. mg) çiçeklenme dönemine denk gelen bitkiler. Deneyin başlangıcında fide bitkilerinde gözlemlenen yüksek kriptolepin konsantrasyonu, fide bitkilerindeki yüksek alkaloid konsantrasyonunun otoburlar için caydırıcı olduğu ve böylece hayatta kalma şansını artırdığı genel görüşle uyumludur (Harborne, 1993). Bitkinin büyüme döneminde kriptolepin konsantrasyonunda keskin bir düşüş gözlendi ve bitkideki en yüksek çiçeklenme dönemine denk gelen en düşük 105 DAP değerinde olduğu bulundu. Bu eğilim, alkaloidler ve büyüme hormonları arasındaki yapısal benzerlik nedeniyle, alkaloidlerin bitki büyümesi üzerinde hormonal bir etkiye sahip olabileceği şeklindeki eski hipotezi açıklayabilir (Waller ve Nowacki, 1978). Bu, aktif büyüme döneminde kriptolepin konsantrasyonundaki düşüşün nedenini açıklayabilir.C. sanguinolenta . Aktif bileşen konsantrasyonundaki bir artış, bitkideki çiçeklenmenin zirve aşamasını takip etti. Cryptolepine hem stake edilmiş (1.75 mg / 100 mg) hem de staked olmayan bitkilerde (1.92 mg / 100 mg) 289 DAP (Şekil 8) en yüksek seviyedeydi. Deneysel sürenin sonunda, kriptolepin konsantrasyonu, istiflenmemiş bitkilerde (1.75 mg / 100 mg), istiflenmiş bitkilerde (1.33 mg / 100 mg) önemli ölçüde daha yüksekti (Şekil 8).


      SONUÇ


      Bu deneyde, C. sanguinolentabitkiler, vahşi doğadaki büyüme koşullarını mümkün olduğunca taklit eden açık bir alanda yağmurla beslenen koşullar altında yetiştirildi. En yüksek kriptolepin konsantrasyonu, 289 DAP'ta kök kuru ağırlığının zirvesi ile aynı zamana denk geldi ve bu, köklerin hasat edilmesi için en uygun zamanı ifade etti. Üç aylık bir dönemde (Şubat, Mart ve Nisan) tohum ekimini kademeli hale getirerek köklerin yılda bir kereden üç kez hasat edilme sayısını artırmak mümkündür. Hasat süresinin uzatılması, doğadan toplanan ürünlere bağımlılığı en aza indirme avantajına sahiptir. Çalışma süresince herhangi bir zararlı veya hastalık problemi ile karşılaşılmadı. Bitkilerin üst üste konulmasının bakla oluşumunu teşvik ettiği ve bu nedenle yeniden dikime yönelik tohumların üretimi için birkaç bitkinin dikilmesinin önerildiği görülmüştür. Tıbbi amaçlı bitkisel üretim içinC. sanguinolenta bitkileri oyalanmadan bırakılmalıdır.


      ÇIKAR ÇATIŞMASI


      Yazarlar herhangi bir çıkar çatışması beyan etmemişlerdir.


      TEŞEKKÜRLER


      Yazarlar, araştırma fonlarını sağladığı için Almanya Volkswagen Vakfı'na ve HPLC analizindeki muazzam yardımı için Gana Standart Otoritesinden Bay Paul Osei-Fosu'ya teşekkür etmek istiyorlar.


      REFERANSLAR
      Ansah C, Khan A, Gooderham NJ (2005). Batı Afrika antimalaryal bitkisel Cryptolepis sanguinolenta ve bunun başlıca alkaloid kriptolepin in vitro genotoksisitesi. Toksikoloji 208 (1): 141-147.
      Crossref
      Bierer DE, Fort DM, Mendez CD, Luo J, Imbach PA, Dubenko LG, Jolad SD, Gerber RE, Litvac J, Lu Q, Zhang P, Reed MJ, Waldeck N, Bruening RC, Noamesi BK, Hector RF, Carlson TJ , King SR (1998). Kriptolepinin antihiperglisemik özelliklerinin etnobotanik yönlendirmeli keşfi: Cryptolepis sanguinolenta'dan izolasyonu, sentezi ve invitro ve in vivo aktiviteler. J. Med. Chem. 41 (6): 894-901.
      Crossref
      Bugyei KA, Boye GL, Addy ME (2010). Akut Komplike Olmayan Falciparum sıtmasının Tedavisinde Cryptolepis Sanguinolenta Kökünün Çay Poşeti Formülasyonunun Klinik Etkinliği. Gana Med. J. 44 (1): 3-9.
      Cimanga K, De Bruyne T, Pieters L, Vlietinck AJ, Turger CA (1997). Cryptolepine ve Cryptolepis sanguinolenta kaynaklı ilgili alkaloidlerin in vitro ve in vivo antiplasmodial aktivitesi. J. Nat. Üretim 60: 688-691.
      Crossref
      Cryptolepine Yapısı - CSID: 74137,

      Görünüm
      Cunningham AB (1993). Afrika şifalı bitkileri. Koruma ve birinci basamak sağlık hizmetleri arasındaki arayüzde önceliklerin belirlenmesi. Bitki ve İnsan Girişimi. UNESCO, Fransa. Mevcut:

      Görünüm
      Dwuma-Badu D, Ayim JS, Fiagbe NI, Knapp JE, Schiff PI, Slatkin DJ (1978). Batı Afrika şifalı bitkilerinin bileşenleri: Cryptolepis sanguinolenta'dan XX Quindoline. J. Pharm. Sci. 67 (3): 433-4.
      Crossref
      Harborne JB (1993). Ekolojik biyokimyaya giriş. 4. baskı. Academic Press, Londra.
      Jansen PCM, Schmelzer GH (2010). Cryptolepis sanguinolenta (Lindl.) Schltr. İçinde: Schmelzer GH ve Gurib-Fakim ​​A (Eds.), Prota 11 (2): Şifalı bitkiler / Plantes médicinales 2. [CD-Rom]. PROTA, Wageningen, Hollanda.
      Kirby GC, Paine A, Warhurst DC, Noamesi BK, Phillipson JD (1995). Bitkilerden türetilen bir indolokinolin olan kriptolepinin in vitro ve in vivo antimalaryal aktivitesi. Phytother. Res. 9: 359-363.
      Crossref
      Kurian A, Sankar A (2007). Medicinal Plants, New India Publishing 356.
      Li TSC (2000). Tıbbi Bitkiler: Kültür, Kullanım ve Fitofarmakoloji. CRC yayıncıları. P 536.
      Luo J, Fort DM, Carlson TJ, Noamesi BK, Nii-Amon-Kotei D, King SR, Tsai J, Quan J, Hobensack C, Lapresca P, Waldeck N, Mendez CD, Jolad SD, Bierer DE, Reaven GM (1998 ). Cryptolepis sanguinolenta: ilaç keşfine etnobotanik bir yaklaşım ve potansiyel olarak faydalı yeni bir antihiperglisemik ajanın izolasyonu. Diabetic Med. 15: 367-374.
      Crossref
      Norman JC (1992). Tropikal sebze bitkileri. Arthur Stockwell Ltd, İngiltere.
      Ofori DA, Darko BO, Gyimah A, Adam KA, Jimoh SO, Jamnadass R (2012). Gana'da Ethobotany, Tıbbi Bitkilerin Yayılması ve Korunması. Gana J. İçin. 28 (1): 29-38.
      Testere IK, Berry MI, Ford JL (2005). Cryptolepine'in Staphylococcus aureus üzerindeki öldürücü etkisi. Lett. Apl. Microbiol. 40: 24-29.
      Crossref
      Sharaf MHM, Schiff Jr PL, Tackie AN, Phoebe Jr CH, Martin GE (1996). Cryptolepis sanguinolenta'dan iki yeni indolokinolin alkaloid: cryptosanguinolentine ve cryptotackieine. J. Heterocycl. Chem. 33: 239-243.
      Crossref
      Singh RS, Bhattacharya TK, Ghosh AC (1996). Tohumla Geliştirilen Bitkilerde Yumru ve Diosgenin Veriminde Değişkenlik ve Şifalı Yemin Tek Düğümlü Yaprak Kesme ve Asma Staking (Dioscorea-Floribunda). Indian J. Agric. Sci. 66 (8): 443-445.
      Singh RK, Singh JP, Lal SS (2008). Kısa Gün Tropikal Koşullar Altında Yüksek Verimli Hint Patates Çeşitlerinde Gelişmeye Göre Kuru Madde Bölümlemesi. Potato J. 35 (3-4): 161-166.
      Tachie AN, Sharaf MHN, Schiff PL, Boye GL, Crouch RC, Martin GE (1991). İndokuinolin alkaloid kriptolepinin proton ve karbon NMR spektrumlarının atanması. J. Heterocycl. Chem. 28: 1429-1435.
      Crossref
      Tackie AN, Boye GL, Sharaf MHM, Schiff PL Jr, Crouch RC, Spitzer TD, Johnson RL, Dunn J, Minick D, Martin GE (1993). Cryptospirolepine, Cryptolepis sanguinolenta'dan İzole Edilen Benzersiz Spiro-asiklik olmayan Alkaloid. J. Nat. Ürünler. 56 (5): 653-670.
      Crossref
      Tempesta MS (2010). Sıtma Tedavisinde Cryptolepis Sanguinolenta'nın Klinik Etkinliği. Gana Med. J. 44 (1): 1-2.
      Waller GR, Nowacki E (1978). Bitkilerde Alkaloid Biyolojisi ve Metabolizması. Plenum Press, New York. Mevcut: Fitokimya 18 (4): 707-708.
      Willcox M, Bodeker G, Rasoanaivo P, Addae-Kyereme J (2004). Geleneksel Şifalı Bitkiler ve Sıtma. CRC Basın. S 464.
      Dünya Sağlık Örgütü (WHO) (2012). Dünya Sıtma Raporu 2012 Bilgi Sayfası. Mevcut: www.who.int/malaria
      Wright CW, Phillipson JD, Awe SO, Kirby GC, Warhurst DC, Quertin-Leclerq J, Angenot L (1996). Kriptolepin ve diğer bazı anhidronyum bazlarının antimalaryal aktivitesi. Phytother. Res. 10: 361-363.
      Crossref

      Yorum yap


      • #4
        Batı Afrika anti-sıtma bitkisel Cryptolepis sanguinolenta'nın in vitro genotoksisitesi ve başlıca alkaloid kriptolepin

        Yazar bağlantıları yer paylaşımı panelini açarCharles Ansah Ayesha Khan Nigel J. Gooderham
        https://doi.org/10.1016/j.tox.2004.11.026Hakları ve içeriği alın Öz

        Batı Afrika anti-sıtma bitkisel Cryptolepis sanguinolenta'nın (Periplocaceae) başlıca alkaloidi olan Cryptolepine (CLP), in vitro olarak çeşitli memeli hücrelerine karşı güçlü toksisite sergileyen bir DNA ara katmanıdır . Kriptolepinin DNA iç içe geçen özelliklerinin memeli hücrelerinde genetik hasarı tetikleyebileceğini varsaydık. Bu nedenle bu çalışmanın amacı, hem kriptolepinin (CLP) hem de geleneksel anti-sıtma formülasyonunun, köklerden elde edilen sulu ekstrenin (CSE) hprt lokusunda mutasyonu ve V79'da mikronüklei (MN) oluşumunu indükleme yeteneğini değerlendirmektir. bir Çin hamstergenetik toksisite çalışmalarında yaygın olarak kullanılan fibroblast hücre hattı. Yüksek yoğunlukta CSE (50 ug / ml) (38 4 karşı mutant klonların / 10 ortalama araç kontrolü ile karşılaştırıldığında, mutant frekans belirgin bir önemli on kat artış neden 6 ancak, CSE bu konsantrasyonu çok toksik olmuştur (canlı kalan hücreler) < % 15 hücre sağkalımı). CLP, kullanılan dozaj aralığında mutajenik görünmemiştir (2,5 μM'ye kadar, 1,1 μg / ml'ye eşdeğer ). Bununla birlikte, V79 hücrelerinin 24 saatlik tedavisinden sonra, hem CSE hem de CLP, mikronükleuslarda% 4,15 ve% 6,43'lük (25 μg / ml CSE ve 2,5 μM, 1,1'e eşdeğer) doza bağlı bir artışa neden olmuştur. μg / ml CLP) araç kontrolünde% 0,36 ile karşılaştırılmıştır. Bu sonuçlar, memeli hücrelerinin CSE ve CLP ile tedavisinin DNA hasarına yol açabileceğini göstermektedir ve sıtma kemoterapisinde CSE'nin rutin kullanımının ve CLP türevlerinin potansiyel kullanımının genotoksik bir risk taşıyabileceğini önermekteyiz.

        Yorum yap


        • #5
          Cryptolepine'in Staphylococcus aureus üzerindeki öldürücü etkisi

          IK Testere

          MI Berry

          JL Ford
          İlk yayınlandı: 10 Kasım 2004

          https://doi.org/10.1111/j.1472-765X.2004.01625.x
          Alıntılar: 24
          JL Ford, Eczacılık ve Kimya Okulu, Liverpool John Moores Üniversitesi, James Parsons Binası, Byrom Street, Liverpool, L3 3AF, İngiltere (e-posta: jlford@livjm.ac.uk ). BÖLÜMLER
          PDF
          ARAÇLAR

          PAYLAŞ Öz

          Amaç: Bu çalışma, alkaloid kriptolepinin antimikrobiyal etkilerini daha ayrıntılı incelemek için yapılmıştır.

          Yöntemler ve Sonuçlar: Kriptolepinin Staphylococcus aureus'a karşı minimum inhibitör konsantrasyonu (MIC) , sıvı dilüsyon yöntemi kullanılarak belirlendi. Kriptolepin varlığında stafilokokların hayatta kalma özelliklerini ve sırasıyla morfolojilerindeki değişiklikleri izlemek için zaman öldürme kinetiği ve taramalı elektron mikroskobu (SEM) teknikleri kullanıldı. Dikkate değer bir antistafilokokal aktivitesi (MIC karşı cryptolepine için kaydedilmiştir S. aureus NCTC 10788 = 5  μ g mi -1 ). Cryptolepine üzerinde litik bir etkiye sahip gibi görünmektedir , S. aureus 4X MIC 3, 6 veya 24 saat tedaviden sonra SEM foto-mikro görüldüğü gibi, örneğin, 20  μ g mi -1kriptolepin. Stafilokok hücrelerinin yüzey morfolojik görünümü de değiştirildi. Litik etki, kriptolepin ile tedaviyi takiben hayatta kalma eğrilerinde kaydedilen düşük canlı sayılarla çakışıyor gibi göründü.

          Çalışmanın Önemi ve Etkisi: Bu bulgular, duyarlı organizmalar kriptolepine maruz kaldığında parçalanmanın meydana geldiğini göstermektedir. Giriş

          Biyoaktif bitki özleri veya bileşenleri şu anda enfeksiyonların yönetimi veya tedavisinde muhtemelen ek ajanlar olarak uygulanabilen kemoterapötik ajanların geliştirilmesinde kullanım için ara ürünler olarak araştırılmaktadır. Bu enfeksiyonların bazıları, normal antibiyotiklere hızla dirençli hale gelen mikroplardan kaynaklanır ( Himejima ve Kubo 1991 ; Kubo ve ark. 1992 ). Bu dirençli organizmalar arasında dikkat çeken Staphylococcus aureus , özellikle de metisiline dirençli suşlarıdır.

          Bazı bitki bazlı antimikrobiyaller, dikkate değer antistafilokokal aktivite içeren etkiler üretmiştir ( Muhammad ve ark. 2000 ). Örneğin, anakardik asit ve totarol, MRSA enfeksiyonlarının tedavisinde kullanılmak üzere bu iki fitokimyasalın geliştirilme potansiyelinden yararlanmak için tek başına ve metisiline dirençli S. aureus'a (MRSA) karşı kombinasyon halinde uygulanmıştır ( Muroi ve Kubo 1996 ). Kawazoe vd. (2001) ayrıca Vitex rotundifolia bitkisinden izole edilen bileşenler için özellikle seçici bir anti-MRSA aktivitesi göstermişken, her ikisi de Arnebia euchroma bitkisinden izole edilmiş alkanin ve shikonin türevleri göstermiştir.MRSA'ya karşı güçlü etkilere sahip olduğu belirtilmiştir ( Shen ve ark. 2002 ).

          Alkaloid, kriptolepin, Cryptolepis sanguinolenta (Periplocaceae) çalılarından elde edilir ( Gellert ve diğerleri, 1951 ). Bu bitki, Batı ve Orta Afrika'da antimikrobiyal ve antimalaryal ajan olarak yaygın olarak kullanılmaktadır ( Boye ve Ampofo 1983 ). Kriptolepin ayrıca sentez yoluyla da üretilebilir ( Holt ve Petrow 1947 ; Fan ve Ablordeppey 1997 ). Cryptolepine geniş bir aktivite spektrumuna sahiptir ( Cimanga ve ark. 1991, 1996 ; Sawer ve ark. 1993 ; Paulo et al. 1994a, b, ) karşı hem bakteriyostatik ve bakterisidal etkinlik de dahil olmak üzereS. aureus ( Boakye ‐ Yiadom ve Heman ‐ Ackah 1979 ). Daha yeni çalışmalar, duyarlı hücrelerin parçalanmasına neden olduğunu ( Sawer ve diğerleri, 1995 ) ve ayrıca DNA'ya girerek Topoizomeraz II aktivitesine müdahale ettiğini ( Bonjean ve diğerleri 1998 ; Dassonneville ve diğerleri 1999 ) ortaya koyuyor gibi görünmektedir . Bu çalışmada, (i) kriptolepinin antibakteriyel etkisinin hücrelerin parçalanmasıyla sonuçlandığına veya (ii) kriptolepinin neden olduğu yoğun parçalanmanın muhtemelen alkaloidin antimikrobiyal uyguladığı modlardan biri olan litik bir etkiye işaret ettiğine dair daha fazla kanıt sunuyoruz. etkilemek. Malzemeler ve yöntemler

          Cryptolepine

          Cryptolepine, Sawer ve ark. Yöntemi kullanılarak elde edilen Cryptolepis sanguinolenta'nın hava ile kurutulmuş köklerinden izole edildi . (1995) . Medya

          Nutrient broth (Oxoid CM1), nutrient agar (Oxoid No.1) ve maksimum geri kazanım broth (Oxoid) kullanıldı. Bunlar, üreticilerin belirttiği şekilde hazırlanmış ve sterilize edilmiştir. Organizmalar ve büyüme koşulları

          Staphylococcus aureus suşları (NCTC 10788; NCTC 11561) besleyici agar yatıklarında tutulmuştur. Kültürler, bir çalkalayıcı su banyosunda (Grant Instruments Ltd, Cambridge, Birleşik Krallık) aerobik koşullar altında 37 ° C'de, kültürler üslü büyüme fazlarına gelene kadar dakikada 150 vuruşla besleyici et suyunda büyütüldü. Bu kültürler, zaman öldürme (hayatta kalma) ve taramalı elektron mikroskobu (SEM) çalışmalarında aşı olarak kullanılmıştır. MIC tayini için, organizmaların 18–24 saatlik besleyici broth kültürleri kullanıldı. MİK'lerin Belirlenmesi

          Stafilokoklara karşı kriptolepinin minimum inhibe edici konsantrasyonları (MIC'ler), daha önce tarif edildiği gibi broth seyreltme yöntemiyle belirlendi ( Sawer ve arkadaşları, 1995 ). Kısaca, kriptolepin seri iki kat seyreltme (0 · 0625–32  μ g ml- 1 ) besin suyu içinde yapıldı ve 2 · 5 ml'lik kısımlar 24 oyuklu mikrotitre plakalarının (Corning Glass Works, Corning, NY, AMERİKA BİRLEŞİK DEVLETLERİ). Stafilokokların on sekiz ila 24 saatlik besleyici broth kültürü, kuyucukları yakl. 10 6  CFU ml −1. MIC, 37 ° C'de 24 saat inkübasyondan sonra görünür bir büyüme sağlamayan en düşük kriptolepin konsantrasyonu olarak tanımlanır. Kriptolepinin çözünmesine, test organizmalarının büyümesini etkilemeyen% 1 h / h DMSO (BDH Ltd, Poole, Dorset, UK) yardımcı oldu. Hayatta kalma eğrileri

          S. aureus suşları NCTC 10788 ve NCTC 11561'in orta logaritmik faz kültürleri, NCTC 10788 ve 10 suşu için 5, 10 veya 20 μ g ml −1 kriptolepin içeren önceden ısıtılmış (37 ° C) iki adet 50 ml'lik porsiyonlara  aktarıldı. NCTC 11561 suşu için 20 ve 40  μ g ml -1 . Bu konsantrasyonlar, her bir organizma için sırasıyla MIC, 2X MIC ve 4X MIC'ye karşılık gelir ( Sawer 1995). Kriptolepinin çözülmesi daha önce olduğu gibi DMSO kullanılarak kolaylaştırıldı. Et suyu, 37 ° C'lik bir sıcaklıkta bir su banyosunda ("organizmalar ve büyüme koşulları" altında olduğu gibi) çalkalanarak muhafaza edildi. 0, 1, 2, 3, 4, 5, 6 ve 24. saatlerde, alikotlar (1 ml) çekildi, kriptolepinin etkisini ve dökme plakası metodolojileriyle belirlenen geçerli sayımların etkisini nötralize etmek için maksimum geri kazanım sıvısında (Oxoid) seyreltildi.

          Seyreltilmiş kültür süspansiyonlarının her birinden bir mililitre steril Petri kaplarına (Sterilin, Bibby Sterilin Ltd, Staffs, İngiltere) ve yakl. 20 ml besleyici agar, eritilmiş ve soğutulmuş (40–45 ° C) eklenir ve karıştırılır. 37 ° C'de 48 saat inkübasyondan sonra koloniler sayıldı ve hayatta kalanların sayısı hesaplandı. Her S. aureus suşuna karşı her kriptolepin konsantrasyonu için en az iki kopya elde edildi . İnaktivasyon ve nötralizasyonun doğrulanması

          Flandrois ve diğerlerinin yöntemi . (1988) ayrıntılı olarak özetlendiği gibi ( Sawer ve diğerleri 1995 ; Sawer 1995 ), taze ortama alt kültür yapılırken kriptolepin miktarlarının antimikrobiyal aktiviteye sahip olup olmadığını izlemek için kullanıldı.

          5, 10, 20 ya da 40 'de  μ g mi -1 en az 94, 86, 80 ve% 80 geri kazanım, sırasıyla cryptolepine taşınan herhangi bir seyreltme ile inaktive olacağını düşündürmektedir stafilokoklar kaydedildi. Buna ek olarak, zaman-öldürme çalışmalarda, cryptolepine her zaman 10 kadar, seyreltilmiş 5 bu şekilde alkaloid inhibe edici seviyesinin altına seyreltilmiş sağlanması, kaplama öncesinde. Kullanılan minimum kriptolepin dilüsyonu 0 · 06  μ g ml -1 idi . Bu ayrıca 10 seyreltilmiş zaman -1 , 1 CFU ml'lik bir verimle alt kültür için -1 kaydedildi. Taramalı elektron mikroskobu

          Kültürleri , S. aureus , 'zaman-öldürme eğrileri' başlığı altında tarif edilen NCTC 10788 ve NCTC 11561 20-40 için, maruz bırakılmış  μ g mi -1 sırasıyla cryptolepine. 37 ° C'de bir su banyosunda çalkalanarak bir kontrol çorbası tutuldu. 3, 6 ve 24 saatte, reaksiyon şişelerinden alikotlar (5 mi) çekildi ve bir Mark IV Auto Bench Santrifüjünde (Baird & Tatlock, Londra, İngiltere) yaklaşık 200  g'de 10 dakika santrifüjlendi .

          Elde edilen peletlerin her biri 10 ml steril su içinde yeniden süspanse edildi ve gece boyunca% 4 v / v glutaraldehit (BDH Ltd) içinde sabitlendi. Örnekler 5 ml'lik kısımlar halinde steril su ( yaklaşık 200  g'de santrifüjlenmiş) ile beş kez yıkanmıştır., 10 dakika) ve peletler nihayet steril su içinde yeniden süspanse edildi. Her süspansiyondan bir damla cam kapak fişlerine (dairesel, 13 mm çaplı) aktarıldı, alüminyum SEM koçanlarına (Agar Scientific Ltd, Stanstead, İngiltere) sabitlendi. Damla ince bir şekilde slip üzerine yayıldı ve oda sıcaklığında havada (2 saat) kurutuldu. Örneklerin tamamen dehidrasyonunu sağlamak için her biri 2–5 dakika olmak üzere, dereceli etanol konsantrasyonları, yani% 70, 80, 90 ve 95 uygulandı. Örnekler, bir model E5000 Polaron Sputter Coating Unit (Polaron Equipment Ltd, New Haven, West Sussex, İngiltere) kullanılarak düşük basınçlı argon atmosferinde altınla kaplanmıştır. İnceleme, 20–25 kV hızlanma voltajlarında ve 9–13 mm çalışma mesafelerinde çalışan bir JEOL JSM ‐ 840 taramalı elektron mikroskobunda (Jeol Technics Ltd, Tokyo, Japonya) gerçekleştirildi. Sonuçlar

          Kriptolepinin S. aureus'un canlılığı üzerindeki etkisi (hayatta kalma eğrileri)

          Şekil 1 (a, b) , S. aureus suşları NCTC 10788 ve NCTC 11561'e karşı kriptolepine yönelik hayatta kalma eğrilerini göstermektedir. Sonuçlar, üç belirlemenin ortalamasıdır (± sd ). Cryptolepine 10, 20 ya da 40 ° C'de  μ g mi -1 üzerindeki etkileri öldürme üretilen , S. aureus NCTC 11561 (> 3 günlük canlı sayımı azalmalar), 6 saat içinde ve öldürme bu seviyeleri, 24 saat muhafaza edilmiştir. İçin , S. aureus NCTC 10788, 20  μ g mi -1 cryptolepine 5 saat içinde canlı sayımı içinde 2 log azalma sağlamıştır. Ancak, 24 saatte, 0 · 5 günlük kurtarmanın kaydedildiği belirgin bir yeniden büyüme oldu. 5 veya 10 μ g ml için kaydedilen inhibitör etkiler İlk 6 saat içinde −1 küçüktü. görüntü Şekil 1
          Şekil görüntüleyicide açPriz
          (a) Hayatta kalma (zaman-öldürme) eğrilerinin Staphylococcus aureus 5 (), 10 () ya da 20 (x) maruz kaldıktan sonra NCTC 10788 μ g mi -1 cryptolepine; kontrol (◆). (b) sağkalım (zaman-öldürme) eğrileri , S. aureus , 10 (), 20 () ya da 40 (x) maruz kaldıktan sonra NCTC 11561 μ g mi -1 cryptolepine arasında; kontrol (◆) Kriptolepinin S. aureus morfolojisi üzerindeki etkisi

          Şekil 2 (a) Şekil tarama elektron mikrografıdır S. aureus 20 maruz kaldıktan sonra NCTC 10788  μ g mi -1 , 3 saat boyunca cryptolepine arasında. Kontrol numunesi ile karşılaştırıldığında ( Şekil 2b ), tedavi edilen hücrelerin bazıları çökmüş göründü ve / veya bir "halka" şekli geliştirdi. Hücrelerin yaklaşık% 30'u 3 saat maruz kaldıktan sonra bazı bozulmalar gösterdi. İçin , S. aureus NCTC 11561, morfolojisinde veya çok az bir değişiklik, başlangıçta 40 maruz kaldıktan sonra gözlenmiştir  μ g mi -1 cryptolepine (gösterilmemiştir resim). görüntü şekil 2
          Şekil görüntüleyicide açPriz
          (a) Tarama elektron mikroskobu , Staphylococcus aureus, 20 maruz kaldıktan sonra NCTC 10788  μ g mi -1 , 3 saat boyunca cryptolepine arasında. (b) Kontrol S. aureus NCTC 10788'in 3 saatte elektron mikrografı taraması. Hücreler normal şekillerini korudu. 24. saatte kontrol hücreleri benzer morfolojiye sahipti. (c) Tarama elektron mikroskobu , S. aureus , 20 maruz kaldıktan sonra NCTC 10788  μ g mi -1 6 saat cryptolepine arasında. (d) tarama elektron fotomikrografı , S. aureus , 20 maruz kaldıktan sonra NCTC 11561  μ g mi -1 6 saat cryptolepine arasında. Lizis gösteren hücreler (ok işaretli). (e) Taranan elektron mikrografıS. Aureus NCTC 10788 20'ye maruz kaldıktan sonra  μ g mi -1 , 24 saat boyunca cryptolepine arasında. Hücreler 'patlıyor' ve içeriklerini kaybetmeye başlıyor. (f) tarama elektron mikrografıdır S. aureus 20 maruz kaldıktan sonra NCTC 11561  μ g mi -1 , 24 saat boyunca cryptolepine arasında
          6 saat sonra, kriptolepin ile tedavi edilen hücreler liziz belirtileri göstermeye başladı ( Şekil 2c, d ; tedavi edilen hücrelerin yaklaşık% 40'ını temsil eder). Litik etki, NCTC 11561 suşunda (oklu hücrelere bakınız) NCTC 10788 suşuna göre daha kapsamlı görünmektedir.

          24 saat sonra, geniş bir parçalama hücreleri içerikleri liç ile yer alıyordu (gösterildiği gibi , Şekil. 2e soy NCTC 10788 için) ve / veya hemen hemen tüm hücrelerin çok kaba deliği ve de görüldüğü gibi dış yüzeylerinin bozuk Şekil. 2f soy NCTC için 11561. Dolayısıyla etkilenen hücreler yaklaşık olarak temsil edilmektedir. Tedavi edilen popülasyonun% 75'i. 24 saatte her iki suş için kontrol hücreleri Şekil 2b ile benzer görünüme sahipti . Tartışma

          Cryptolepine, Gram pozitif bakterilere karşı Gram negatif olanlara göre daha aktiftir ( Sawer ve diğerleri 1993 ). Bu çalışmada kullanılan Gram pozitifler arasında kriptolepin aktivitesi, S. aureus NCTC 10788'e (MIC 5 μ g ml -1 ) karşı en yüksek düzeydedir  . Diğer araştırmacılar ( Boakye ‐ Yiadom ve Heman ‐ Ackah 1979 ) daha önce kriptolepinin S. aureus hücrelerinde parçalanmaya neden olabileceğini tahmin etmişlerdi . Bu, bakterilerin kriptolepine maruz kalmasının ardından Geiger sayım prosedürleri ile izlendiği üzere, canlı sayımlardaki keskin düşüşlerden çıkarılmıştır.

          S. aureus suşları NCTC 10788 ve NCTC 11561'in ( Şekil 1a, b ) canlı sayısındaki düşüşler, kriptolepine 6 veya 24 saat maruz kaldıktan sonra SEM fotomikrograflarında görüldüğü gibi hücrelerin parçalanmasıyla çakışmıştır ( Şekil 2c – f ) ve 3 saatte gözlenebilen halka şeklindeki hücreler ( Şekil 2a ). Pek çok biyositin büyüyen bakterilerde morfolojik değişikliklere neden olduğu bildirilmiştir. Bunlar β -laktam antibiyotikler ( 1985 Reynolds ), 2-fenoksietanol ( Gilbert ve ark. 1977 ), quinolon ( Guan ve Burnham 1992 ), fosfamisin ( Carlone ve ark. 1982 , diğerleri arasında). Daha önceki bir rapordaSawer vd. (1995) , cryptolepine'in bakteri ve mantarlarda ciddi ultrastrüktürel değişikliklere neden olduğu kaydedildi. Şekil 2c-f'de görüldüğü gibi, alkaloidin kriptolepine duyarlı hücreler üzerindeki etkisinden kaynaklanmış olabilecek hücrelerin parçalanması kaydedildi.

          Duyarlı hücrelerde parçalanmaya neden olan antimikrobiyal ajanlar, bir dizi mekanizma ile hareket eder. Örneğin, bazı ajanlar (lincomycin ve chloramphenicol) protein sentezini inhibe ederek etki gösterirken, diğerleri hücre duvarı sentezine müdahale eder ( Greenwood ve O'Grady 1972 ). Sonuçlar

          Stafilokokal hücrelere parçalanma, kriptolepine maruz kalmanın ardından gözlemlendi ve bu, bakteri sayısındaki keskin düşüşlerle aynı zamana denk geldi. Kriptolepin inhibitör konsantrasyonlarına 3, 6 veya 24 saat maruz kaldıktan sonra S. aureus hücrelerinin SEM fotomikrograflarında gösterildiği gibi deforme olmuş hücrelerin oluşumu vardı. Hücre duvarları, sentez sırasında bozulmuş olabilir veya otolitik enzimlerin salınmasının neden olduğu hücre ölümünden sonra deforme olmuş olabilir.

          Yorum yap

          Hazırlanıyor...
          X