Duyuru

Collapse
No announcement yet.

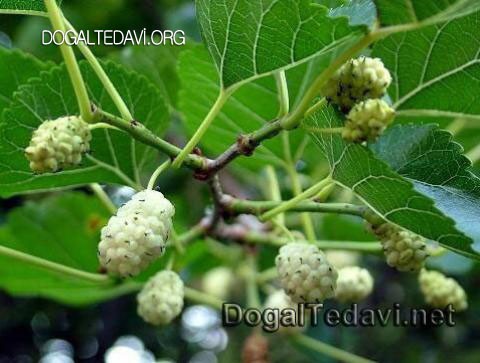
Dut, Maulbeere, Morus nigra

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Dut, Maulbeere, Morus nigra

    DUT


    Ağaç | 4-6m | 4-7 Aylar | Ca | Meyvesi, Kabuğu, Yaprağı

    Dut, Maulbeere, Morus nigra
    Karadut Schwarze Maulbeere

    Familyası: Dutgillerden, Maulbeergewaechse, Moraceae

    Drugları: Karadut meyvesi: Mori nigra fructus
    Karadut yaprağı: Mori nigra folium
    Karadut kabuğu: Mori nigra radix cortex

    Dutun yaprak ve kök kabuklarının çayı, meyvelerinin ise reçel ve şurubu yapılır veya kurutularak kurusu ya da taze olarak yenir.

    Botanik: Vatanı Türkistan olan dut batıda İran, Irak, Türkiye, Akdeniz ülkeleri, Avrupa'ya ve doğuda Çin'e kadar çok geniş bir alana yayılmıştır. Dutun karadut (morus nigra) ve beyaz dut (morus alba) dışında ayrıca Hint dutu veya noni (morinda citrifolia) olarak bilinen bir dut daha vardır ki familya olarak kökboyagiller ailesine aittir. Bizi burada ilgilendiren bu üç tür olup kısaca her birini inceleyeceğiz. Karadut genellikle 4-7metre boyunda küçük bir ağaçtır, beyaz dut ise 10-30metre boyunda oldukça iri bir ağaçtır. Karadutun yaprakları kalp şeklinde ucu hafif sivri, kenarları kertikli, üst yüzeyi parlak ve koyu alt yüzeyi mat, ortadan başa kadar ana bir damar ve ondan sağa sola ayrılan yan damarlardan oluşur. Dişi çiçekleri yumurta şeklinde oturmuş vaziyette ve oldukça küçük iken erkek çiçekleri eliptik bir şekilde olup topluca bir arada başak görünümü verir. Meyveleri önce yeşil sonra beyazımsı yeşil sonra pembe ve sonra kırmızımsı ve de en sonunda morumsu bir renk alır.

    Hasat zamanı: Meyveleri olgunlaştıktan sonra toplanır, ya kurutulur kışa saklanır, ya şurubu yapılır veya yenir. Yaprak ve kök kabukları iyice kurutulduktan sonra porselen kaplarda muhafaza edilir.

    Birleşimi:
    a) Meyvelerinde; Şeker, Organik asitler; Malik asit (elma asidi), Tartarik asit (üzüm asidi) ve Sitrik asit (limon asidi) içerir. Ayrıca Flavonitler, Kumarinler, Tanen a, B1, B2 ve C vitaminleri içerir.
    b) Kök kabukları; Antrachinon (Antrakinon) türevleri; Nordamnacanthal ve Moridon içerir. Bu Antrakinon türevleri eskiden Türkler tarafından tekstilde kırmızı boyar madde olarak kullanılmıştır ve Avrupalılar tarafından <>diye anılmıştır.

    Özellikleri: Meyveleri tatlı, soğuk, yaprakları ise acıdır.

    Tesir şekli: Meyveleri; müshil yapıcı, hazmettirici, antiseptik ve iltihapları önleyicidir. Yaprakları; balgam söktürücü, antibakteriyel, terletici, kandaki şekeri düşürücü. Kök kabukları; teskin edici, tansiyon düşürücü, balgam söktürücü, müshil yapıcı ve bağırsak kurtlarını düşürücü özelliklere sahiptir.

    Kullanılması:
    a) Üniversite kliniklerinde tedavi denemesi ve araştırma yapılmıştır. Bu öre başta TANSİYON DİYABET ve kolesterola karşı etkili ve antioksidandır.
    b) Halk arasında kök kabuğu ateş düşürücü özeliğe sahiptir bu nedenle kök kabuklarından yapılan çay ateş düşürmek için kullanılır. Meyveleri veya meyve şurubu ise çocukların ağzındaki pamukçuğu önlemek için kullanılır.
    c) Yaprakları halk arasında bağırsak kurtlarını düşürmek için çayı yapılır ve içilirse kurtları düşürür ve de kök kabukları gibi ateş düşürücü özelliğe sahiptir.

    Çay: İki tatlı kaşığı dut yaprağı veya kök kabuğu demliğe konur ve üzerine 300-500 ml kaynar su doldurulur ve 5-10 dakika demlemeye bıraktıktan sonra süzülerek içilir.

    Yan tesirleri: Meyvesinin fazla yenmesi ishale sebep olur.

    Ağaç | 10-30m | 4-6 Aylar | Ca

    B) Beyazdut, Weisse Maulbeere, Morus alba

    Drugları: Beyaz dut meyvesi; Mori alba fructus
    Beyaz dut yaprağı; Mori alba folium
    Beyaz dut kök kabuğu; Mori alba radix cortex
    Beyaz dutun meyve, yaprak, kök kabuklarında aynı karadutta olduğu gibi kullanılır. Beyaz dut karadut farkı oldukça büyük bir ağaç olması ve ipekböceği yetiştirmek için yapraklarının kullanılmasıdır.

    C) Noni, İndische Maulbeerbaum, Morinda citrifolia
    Bu bitki çok geniş bir şekilde incelenmiştir noniye bakın.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Dut Yaprağı ( Morus alba L.) Ekstraktları ve Klorojenik Asit İzomer Bileşeni, MiR-34a'yı Azaltarak ve Enflamasyonu Azaltarak Glikolipotoksisiteye Bağlı Hepatik Lipit Birikmesini İyileştirir

    Tsung-Yuan Yang , Kavramsallaştırma , Veri iyileştirme , Yazma - orijinal taslak , 1, 2, † Meng-Hsun Yu , Veri iyileştirme , Resmi analiz , 3, 4 Yi-Liang Wu , Araştırma , Metodoloji , 5, 6 Ching-Chun Hong , Resmi analiz , Proje yönetimi , 7 Chin-Shuh Chen , Kaynaklar , Denetim , 7 Kuei-Chuan Chan ,Kavramsallaştırma , Denetim , Yazma – gözden geçirme ve düzenleme , 1, 2, * ve Chau-Jong Wang , Kavramsallaştırma , Denetim , Yazma – inceleme ve düzenleme 3, 8, *
    Naoki Tanaka, Akademik Editör
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
    1 Dahiliye Bölümü, Chung-Shan Tıp Üniversite Hastanesi, No. 110, Bölüm 1, Jianguo N. Road, Taichung 402, Tayvan
    2 Tıp Fakültesi, Tıp Enstitüsü, Chung-Shan Tıp Üniversitesi, No. 110, Bölüm 1, Jianguo N. Yolu, Taichung 402, Tayvan
    3 Sağlık Endüstrisi Teknoloji Yönetimi Departmanı, Chung Shan Tıp Üniversitesi, No. 110, Bölüm 1, Jianguo N. Road, Taichung 402, Tayvan
    4 Beslenme Bölümü, Chung Shan Tıp Üniversitesi, No. 110, Bölüm 1, Jianguo N. Yolu, Taichung 402, Tayvan
    5 Kardiyovasküler Cerrahi Bölümü, Cerrahi Bölüm, Chung Shan Tıp Üniversite Hastanesi, No. 110, Bölüm 1, Jianguo N. Road, Taichung 402, Tayvan
    6 Cerrahi Bölümü, Tıp Fakültesi, Chung-Shan Tıp Üniversitesi, No. 110, Bölüm 1, Jianguo N. Yolu, Taichung 402, Tayvan
    7 Gıda Bilimi ve Biyoteknoloji Bölümü, Ulusal Chung Hsing Üniversitesi, Taichung 402, Tayvan
    8 Tıbbi Araştırma Bölümü, Chung Shan Tıp Üniversitesi Hastanesi, No. 110, Bölüm 1, Jianguo N. Yolu, Taichung 402, Tayvan
    * Yazışma: ten.tenih.61sm@ieukehc (K.-CC); wt.ude.umsc@jcw (C.-JW); Tel.: +886-4-247-30022 (dahili 34704) (K.-CC & C.-JW)
    † Bu yazarlar bu çalışmaya eşit katkıda bulunmuştur. İlişkili Veriler

    Veri Kullanılabilirliği Bildirimi
    Git: Soyut

    Dut yaprağı ( Morus albaL.) hipertansiyon, diyabet ve hiperlipidemi gibi çeşitli metabolik hastalıkları tedavi etmek için geleneksel bir ilaç ve potansiyel sağlık gıdası olarak kullanılır. Bununla birlikte, dut yapraklarının fonksiyonel bileşenlerinin diyabetik steatohepatite aracılık ettiği mekanizmaları araştırdık. Glikolipotoksisite ile indüklenen HepG2 hücrelerinin in vitro bir modelini uyguladık ve MLE ile onun ana bileşenleri olan nCGA, Crp ve CGA'nın etkilerini değerlendirdik. Sonuçlar, MLE ve nCGA'nın SREBP-1/FASN, SREBP-2/HMG-CoAR'ı inhibe ederek ve PPARa/CPT-1'i aktive ederek karaciğer yağ birikimini azalttığını gösterdi. Ek olarak, MLE ve nCGA, steatohepatiti hafifletmek için NF-κB, TNF-α ve IL-6 ile ilişkili inflamatuar yanıtları azaltmıştır. Ayrıca, MLE ve nCGA'nın miR-34a'yı aşağı doğru düzenleyerek anti-glukolipotoksik etkiler uyguladığını, böylece SIRT1/AMPK sinyalini aktive ettiğini gösterdik,

    Anahtar Kelimeler: dut yaprağı ekstresi, neoklorojenik asit, alkolsüz yağlı karaciğer hastalığı, hepatik lipid birikimi ve inflamasyonu, miR-34a
    Git: 1. Giriş

    Diabetes mellitus'a esas olarak insülin direnci neden olur ve diyabetli hastalarda sıklıkla obezite, hipertansiyon ve hiperlipidemi gibi diğer metabolik anormallikler de görülür. Aşırı vücut yağ birikimi, diyabetin yaygın bir komplikasyonu olan NAFLD veya diyabetik steatohepatite neden olabilir. Tedavi edilmediği takdirde, diyabetik steatohepatit karaciğer fibrozu veya siroza yol açabilir ve hatta hepatoselüler karsinoma neden olabilir [ 1 ]. Bu nedenle diyabetik steatohepatitin önlenmesi ve tedavisi dünya çapında önemli bir sağlık sorunu haline gelmiştir. Kronik glukolipotoksisite ve insülin direnci, NAFLD'nin diyabetik steatohepatite ilerlemesini teşvik edebilir ve kalıcı hiperglisemi, subklinik inflamasyon ve diyabetik steatohepatitin seyrinde gözlenen anahtar bir olgudur [ 2]. Ek olarak, hepatik inflamasyon karaciğere serbest yağ asitlerinin akışını artırabilir, intrahepatik trigliseritleri indükleyebilir ve ardından lipid peroksidasyonu ve mitokondriyal disfonksiyon yoluyla lipogenez ve hepatoselüler hasara yol açabilir [3 ] . Ayrıca, lipotoksisitenin neden olduğu balonlaşma, steatohepatitte hücre stresi ve apoptozun kısır döngüsüne yol açabilir.

    MikroRNA'lar (miR), insülin direncini, adipogenezi ve lipid metabolizmasını etkileyen kodlayıcı olmayan küçük RNA'lardır [ 4 ]. Ayrıca metabolik sendrom ve ateroskleroz dahil olmak üzere lipid metabolizması ile ilişkili bozuklukların düzenlenmesinde önemli bir rol oynarlar [ 5 ]. Karaciğerde adenovirüs aracılı miR-34a ekspresyonu, NAFLD'de bir artışla ilişkilendirilirken, miR-34a ekspresyonunun inhibisyonunun ters etkiye sahip olduğu gösterilmiştir [ 6 , 7]. Bununla birlikte, hepatosit miR-34a'nın NAFLD'nin steatohepatite ilerlemesindeki veya bunun tersine çevrilmesindeki rolü açıklığa kavuşturulmayı beklemektedir. Bu miR'lerin potansiyel hedef genleri, hepatik lipidlerin sentezinde yer alan sterol düzenleyici element bağlayıcı protein 1 (SREBP-1) ve SREBP-2'yi içerir [8 ] . SREBP-1, yağ asitleri için gerekli olan genlerin transkripsiyonunu arttırır ve yağ asidi sentezi ile bağlantılıdır; SREBP-2, kolesterol metabolizmasında yer alan genlerin transkripsiyonunu modüle eder [ 9 ]. Rspo1 ve Rspo3'ün oleik asit (OA) kaynaklı kolesterol sentezini tersine çevirdiği, adenozin monofosfatla aktive olan protein kinazın (AMPK) fosforilasyonunu desteklediği ve SREBP-2'nin ekspresyonunu azalttığı gösterilmiştir [ 10]. Sirtuin 1'in (SIRT1), resveratrolün AMPK'yi uyarma ve mitokondriyal fonksiyonu iyileştirme yeteneğinde kritik bir rol oynadığı gösterilmiştir [ 11 ]. Ek olarak, proliferatörle aktive olan reseptör alfa (PPARa), AMPK ve SREBP dahil olmak üzere birçok nükleer reseptörün, NAYKH patogenezi sırasında lipid homeostazının düzenlenmesinde anahtar rol oynadığı gösterilmiştir [12 ] . Bir fare modeli, antrodanın AMPK/SIRT1/SREBP/PPARa yolu [ 13 ] yoluyla yüksek yağ ve yüksek fruktozlu diyete bağlı NAFLD'yi hafifletebileceğini bulmuştur . AMPK, proteinleri doğrudan fosforile ederek veya yağ asidi oksidasyonu, sentezi ve lipitlerin lipolizi gibi çoklu yollarda gen transkripsiyonunu modüle ederek anabolizma veya katabolizmanın düzenlenmesi için gerekli olan bir enzimdir.14 ]. Bu nedenle SIRT1/AMPK yolu, steatohepatitin önlenmesinde ümit verici bir hedeftir.

    Lipit homeostazının düzenlenmesi için gerekli enzimler olan yağ asidi sentazı (FASN) ve hidroksimetilglutaril-CoA redüktaz (HMG-CoAR) ifadelerinin, kolesterol sentezinin belirteçleri olduğu kabul edilir [12 ] . Tersine, karnitin palmitoiltransferaz-1 (CPT-1) ve PPARa ifadeleri, yağ asidi oksidasyonunun yukarı regülasyonunda kilit roller oynar. Daha önceki bir hayvan modeli, yüksek glikozla beslenen sıçanların, yüksek seviyelerde nükleer faktör Kappa-B (NF-κB), tümör nekroz faktörü alfa (TNF-α) ve interlökin 6'nın (IL-6) neden olduğu karaciğer hasarını artırdığını gösterdi [ 15 ]. NAFLD sırasında NF-κB, IL-6 ve TNF-α gibi proinflamatuar sitokinlerin üretiminden sorumludur [ 16]. Karaciğer makrofajlarında azalmış NF-κB aktivitesi de azalmış karaciğer inflamasyonu ile ilişkilendirilmiştir [ 17 ].

    Dut yaprağı ( Morus alba L. ), Çin, Japonya ve Kore'de yaygın olarak yetiştirilen Moraceae familyasına ait çiçekli bitkilerin bir cinsidir [ 18 ] ve Deoksinojirimisin (DNJ), fenolikler, antosiyaninler, flavonoidler ve polifenolik amidler [ 19]. Ek olarak, esas olarak üç klorojenik asit (CGA) izomeri, yani neoklorojenik asit (nCGA), kriptoklorojenik asit (Crp) ve CGA içeren dut yaprağı ekstraktında (MLE) bulunan polifenolik bileşikleri izole ettik ve tanımladık. Bununla birlikte, MLE ve ana bileşenlerinin diyabetik steatohepatiti iyileştirdiği mekanizmalar açıklığa kavuşturulmamıştır. Ek olarak, CGA izomerlerinin lipit metabolizması üzerindeki anti-enflamatuar mekanizmaları da bilinmemektedir. Burada, HepG2 hücrelerinde in vitro bir glukolipotoksisite (OA + yüksek glikoz; OH) kaynaklı lipid birikimi ve iltihaplanma modeli oluşturduk. Hipotezimiz, CGA izomerlerinin, NF-κB ve TNF-α ile ilişkili sinyallemenin inhibisyonu yoluyla enflamatuar yanıtların zayıflaması ve miR-34a'nın aşağı regülasyonu dahil olmak üzere çeşitli mekanizmalar yoluyla hepatik lipid birikimini azaltabileceğiydi. SIRT1/AMPK yolunun aktivasyonuna ve ardından lipid β-oksidasyon enzimlerinin ve lipogenez ile ilişkili transkripsiyon faktörlerinin modülasyonuna yol açar. Bu mekanizmaların hedeflenmesi, diyabetik steatohepatitin tedavisi için yeni bir yaklaşım arayabilir.

    Git: 2. Sonuçlar

    2.1. Canlılığın MLE ve CGA İzomeri ile Tedavi Edilen HepG2 Hücreleri Üzerindeki Etkisi

    MLE ve CGA'ya maruz kalan HepG2 hücrelerinin canlılığı, MTT tahlili kullanılarak değerlendirildi. belirtildiği gibiŞekil 1, HepG2 hücreleri, 24 veya 48 saat boyunca farklı konsantrasyonlarda MLE (1,0–10,0 mg/mL) ve nCGA (0–300 μM) ile tedaviden sonra sitotoksisite göstermedi. Ayrıca, 24 veya 48 saat boyunca farklı konsantrasyonlarda Crp (0–300 μM) ve CGA (0–300 μM) ile tedavi, HepG2 hücreleri için sitotoksik değildi. Sonuç olarak bu sonuçlar, CGA izomer tedavilerinin HepG2 hücre canlılığı üzerinde önemli bir etkisinin olmadığını ve sonraki deneyler için temel teşkil ettiğini göstermektedir.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g001.jpg'dir.
    Şekil 1
    HepG2 hücreleri, 24 ve 48 saat boyunca farklı konsantrasyonlarda MLE (1.0, 3.0, 5.0 ve 10.0 mg/mL) ve nCGA, Crp ve CGA (0, 50, 100, 150, 200 ve 300 uM) ile muamele edildi. MTT tahlili ile HepG2 hücrelerinin hücre canlılığını belirleyin. Değerler, tedavi başına üç kopyanın ortalama ± SD'sidir. * p < 0.05, kontrol grubuna göre. 2.2. Oleik Asit ve Yüksek Glikoz Kaynaklı Lipid Birikiminin Etkisi

    Önceki bir çalışma, OA'nın lipid birikimini hızlandırabileceğini ortaya koydu [ 20 ]. Bu nedenle, HepG2 hücresinde 24 saat boyunca lipit birikimi üretimini uyarmak için sırasıyla 25 mM yüksek glikoz (HG), 300 uM OA ve OH kullanarak bir glukolipotoksisite modeli oluşturduk. (şekil 2A). Yağ kırmızısı O boyama, OA ve OH tedavisinin HepG2 hücrelerinde lipid birikimini indüklediğini ve lipid içeriğinin OH gruplarında önemli ölçüde daha yüksek olduğunu gösterdi. HepG2 hücreleri Nil kırmızısı ile boyandı ve akış sitometrisi kullanılarak ölçüldü, bu da lipit içeriğinin OH gruplarında önemli ölçüde daha yüksek olduğunu gösterdi (şekil 2B).
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g002.jpg
    şekil 2
    HepG2 hücrelerinde OA ve HG kaynaklı lipid birikimi ile tedavi. HepG2 hücreleri, 24 saat boyunca 25 mM HG, OA ve OH ile muamele edildi. Hücre içi lipid birikimi, ( A ) yağ kırmızısı O boyaması ve ( B ) Nil kırmızısı boyaması ile ölçüldü . Değerler, tedavi başına üç kopya için ortalama ± SD'dir. # p < 0.05 vs. kontrol grubu. 2.3. MLE ve CGA İzomerlerinin Lipit Birikimi Üzerindeki Önleyici Etkisi

    HepG2 hücreleri, 24 saat boyunca 37 °C'de OH ve çeşitli konsantrasyonlarda MLE (1, 3 veya 5 mg/mL) veya CGA izomerleri ile işlendi. Hücre içi lipid birikimi, yağ kırmızısı O boyaması kullanılarak ölçüldü; bu, HepG2 hücrelerinde lipid birikiminin, MLE konsantrasyonu ≥3,0 mg/mL veya nCGA, Crp ve CGA ≥50 μM, ≥100 μM olduğunda inhibe edildiğini gösterdi. ve sırasıyla ≥200 μM. Niceleme, kolorimetrik analiz kullanılarak belirlendi ve lipid birikiminin OH tarafından indüklendiği gösterildi.

    Daha sonra bu üç CGA izomerinin farklı hafifletme etkilerini aynı 50 μM konsantrasyonda değerlendirdik. OH kültürlü HepG2 hücreleri, 24 saat boyunca 37 °C'de 50 uM CGA izomerleri ile işlendi. Hücre içi lipid birikimi, yağ kırmızısı O boyaması kullanılarak ölçüldü (Figür 3E), HepG2 hücrelerinde lipit birikiminin sadece 50 uM nCGA tarafından inhibe edildiğini, ancak 50 uM Crp veya 50 uM CGA tarafından inhibe edilmediğini gösterdi. Başka bir deyişle, nCGA, diğer iki CGA izomeri ile karşılaştırıldığında en güçlü hafifletme etkisine sahipti, bu da nCGA'nın MLE'nin ana fonksiyonel bileşeni olabileceğini düşündürür. Diğer OH kültürlü HepG2 hücreleri, 24 saat boyunca 37 °C'de 3 mg/mL MLE ve 50/150 uM nCGA ile muamele edildi (Figür 3F). HepG2 hücrelerinde lipid birikimi, MLE konsantrasyonu 3,0 mg/mL ve nCGA konsantrasyonu 50 veya 150 uM olduğunda da önemli ölçüde inhibe edildi.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesnenin adı besin-14-04808-g003a.jpg'dir.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g003b.jpg
    Figür 3
    MLE ve CGA izomerlerinin OH ile muamele edilmiş HepG2 hücrelerinde lipid birikimi üzerindeki etkisi. HepG2 hücreleri, 300 uM oleik asit + 25 mM yüksek glikoz (OH) ve çeşitli konsantrasyonlarda ( A ) MLE ( B ) nCGA ( C ) Crp ve ( D ) CGA ile 37 °C'de 24 saat süreyle işleme tabi tutuldu. Hücre içi lipid birikimi, yağ kırmızısı O lekelemesi ile ölçüldü. ( E ) Bu CGA izomerlerinin HepG2 hücrelerinde lipid birikimi üzerindeki farklı hafifletme etkileri; nCGA, diğer iki CGA izomeri ile karşılaştırıldığında en önemli hafifletme etkisine sahipti. ( F ) HepG2 hücrelerinde lipit birikimi, Nil kırmızısı boyaması ile belirlendiği üzere inhibe edildi. Değerler, tedavi başına üç tekrardan elde edilen ortalama ± SD'dir. #p _Kontrol grubuna göre < 0,05. * p < 0,05 - OH grubu. 2.4. MLE ve nCGA, OH-Kültürlü HepG2 Hücrelerinde AMPK Sinyal Yolunu ve β-Oksidatif Sinyal Yolunu Etkinleştirdi

    AMPK'nin lipogenez aracısı olduğu ve steatohepatit patogenezinde kritik bir rol oynadığı bildirilmiştir. Da gösterildiği gibiŞekil 4A.OH tedavisi, kontrollere kıyasla pAMPK/AMPK ekspresyonunu önemli ölçüde azaltırken, MLE (3 mg/mL) ve nCGA (50 veya 150 uM) ile birlikte uygulama etkileri tersine çevirdi.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g004a.jpg
    İçinde resim, resim vb. bulunan harici bir dosya. Nesnenin adı besin-14-04808-g004b.jpg
    Şekil 4
    MLE ve nCGA'nın OH kaynaklı HepG2 hücrelerinde çoklu sinyal yolları üzerindeki etkileri. HepG2 hücreleri, 24 saat boyunca 37 °C'de OH, MLE (3 mg/mL) ve nCGA (50 veya 150 uM) ile birlikte işleme tabi tutuldu. Protein özleri, Western Immunoblotlama ile ölçüldü; α-tubulin dahili kontrol olarak kullanıldı. MLE ve nCGA , OH ile indüklenen HepG2 hücrelerinde ( A ) pAMPK/AMPK ve ( B ) PPARa/CPT-1 sinyal yollarını aktive etti, ancak azalttı ( C ) SREBP-1/FASN ve ( D ) SREBP-2/HMG-CoAR proteini ifade. Değerler, üç bağımsız deneyin ortalama ± SD'sidir. # p < 0.05 vs. kontrol grubu. * p < 0,05 - OH grubu.

    CPT-1, yağ asidi β-oksidasyonunun mitokondriyal tepkisinde hız sınırlayıcı bir enzimdir. SonuçlarıŞekil 4B, OH tarafından indüklenen HepG2 hücrelerinde aşırı lipid birikiminin, CPT-1 ekspresyonunun kontrol grubu ile karşılaştırıldığında önemli ölçüde azaldığını göstermektedir. MLE (3 mg/mL) ve nCGA (150 uM) ile tedaviden sonra, CPT-1 proteini, MLE ve nCGA'nın yağ asidi β-oksidasyonunu destekleyebileceğini gösteren önemli bir artış eğilimi gösterdi. 2.5. OH-Kültürlü HepG2 Hücrelerinde MLE ve nCGA Azaltılmış Lipogenez ile İlişkili Protein İfadesi

    MLE ve nCGA'nın hepatik lipid birikimi ifadesini azaltıp azaltmadığını belirlemek için SREBP, FASN ve HMG-CoAR gibi lipojenik proteinlerin ifadesini araştırdık. HepG2 hücreleri, 24 saat boyunca 37 °C'de OH, MLE (3 mg/mL) ve nCGA (50 veya 150 uM) ile birlikte işleme tabi tutuldu. HepG2 hücrelerinden alınan protein özleri, SREBP-1, FASN, SREBP-2 ve HMG-CoAR'ı tespit etmek için Western lekeleme ile ölçüldü; α-tubulin yükleme kontrolü olarak kullanıldı. OH, SREBP-1 ve FASN (Şekil 4C). Ayrıca, MLE ve nCGA, SREBP-2 ve HMG-CoAR'ın OH kaynaklı ifadelerini önemli ölçüde bastırdı (Şekil 4D) kolesterol sentezinde yer alırlar. 2.6. MLE ve nCGA'nın OH-İndüklü HepG2 Hücrelerinde Yağ Asidi Oksidasyonuyla İlişkili ve Enflamatuvar Protein İfadeleri Üzerindeki Etkileri

    Önceki raporlar, PPARa'nın yukarı regülasyonunun ve artan yağ asidi oksidasyonunun lipid birikimine ve steatohepatite karşı koruyabileceğini göstermiştir [ 21 , 22 ]. Bu nedenle, MLE ve nCGA'nın yağ asidi oksidasyonunda yer alan PPARa ve CPT-1 ifadeleri üzerindeki etkilerini değerlendirdik. Gösterilen sonuçlarŞekil 4B, OH, PPARa ve CPT-1'in ifadelerini önemli ölçüde inhibe etti. Ayrıca, OH'nin MLE (3 mg/mL) ve nCGA (50 veya 150 μM) ile birlikte işlenmesi, PPARa ve CPT-1'in ifadelerini arttırdı. TNF-α, hepatoselüler inflamasyon ve steatohepatitin patofizyolojisinde kritik bir rol oynar . Sonuçlarımız, OH'nin IL-6 ve TNF-α ifadelerini önemli ölçüde desteklediğini gösterdi (Şekil 5). Ek olarak, OH'nin MLE ve nCGA ile birlikte işlenmesi, NF-κB, TNF-α ve IL-6'nın ifadelerini azaltmıştır.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g005.jpg'dir.
    Şekil 5
    MLE ve nCGA, OH kaynaklı HepG2 hücrelerinde enflamatuar protein ifadelerini azalttı. HepG2 hücreleri, 24 saat boyunca 37 °C'de OH, MLE (3 mg/mL) ve nCGA (50 veya 150 uM) ile birlikte işleme tabi tutuldu. HepG2 hücrelerinden alınan protein özleri, TNF-a, NF-κB ve IL-6'yı tespit etmek için Western lekeleme ile ölçüldü; α-tubulin yükleme kontrolü olarak kullanıldı. Değerler, üç bağımsız deneyin ortalama ± SD'sidir. Veriler, tek yönlü ANOVA ve ardından Duncan'ın yeni çoklu aralık testi kullanılarak temsil edildi. Ortak bir harfi paylaşmayan nicel çubuklar birbirinden önemli ölçüde farklıdır ( p < 0.05). 2.7. OH-İndüklenmiş HepG2 Hücrelerinde MiR-34a İnhibitörü Aktive Edilmiş SIRT1, p-AMPK/AMPK ve PPARa Sinyal Yolları

    MiR-34a'nın NAYKH ve diyabetik steatohepatitte anahtar rol oynadığı düşünülmektedir [ 23 ]. Mekanik olarak, miR-34a'nın inhibe edilmesi, lipid birikimini ve apoptozu azaltarak steatohepatit gelişimini engelleyebilir. Da gösterildiği gibiŞekil 6, OH tedavisi, kontrollere kıyasla miR-34a ekspresyonunu önemli ölçüde artırırken, MLE (3 mg/mL) ve nCGA (50 uM) ile birlikte uygulama etkileri tersine çevirdi. Ayrıca, bir miR-34a inhibitörü ile tedavi, SIRT1, p-AMPK/AMPK ve PPARa'nın ifadelerini arttırdı. Bu sonuçlar, bir miR-34a inhibitörünün, lipogenez ve β-oksidatif sinyal yolunda yer alan SIRT1, p-AMPK/AMPK ve PPARa ifadeleri üzerindeki etkilerini gösterdi.
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g006.jpg'dir.
    Şekil 6
    MLE ve nCGA, OH kaynaklı HepG2 hücrelerinde miR-34a ekspresyonunu azalttı. ( A ) HepG2 hücreleri, 24 saat boyunca 37 °C'de OH, MLE (3 mg/mL) ve nCGA (50 uM) ile birlikte işleme tabi tutuldu. miR-34a seviyesi, Real-Time PCR kullanılarak analiz edildi. ( B ) HepG2 hücrelerinde miR-34a mimikleri veya inhibitörleri ile transfeksiyon, SIRT1, PPAR-a ve p-AMPK/AMPK'yi saptamak için Western lekeleme ile ölçüldü. Değerler, üç bağımsız deneyin ortalama ± SD'sidir. Veriler, Student t testi kullanılarak temsil edildi. # p < 0.05 vs. kontrol grubu. * p < 0,05 - OH grubu.

    Özetle, sonuçlarımız MLE ve nCGA'nın miR-34a'yı etkisiz hale getirebileceğini, bunun da lipid β-oksidasyon enzimlerinin ve SREBP-1 gibi lipogenezle ilişkili transkripsiyon faktörlerinin ifadelerini modüle eden SIRT1/AMPK sinyalinin yukarı regülasyonuna yol açabileceğini gösterdi. SREBP-2, FASN ve HMG-CoAR veya enflamatuar süreçlerin inhibisyonu, hepatik lipid birikiminin remisyonuna yol açar. MLE ve nCGA ayrıca NF-κB, TNF-α ve IL-6'nın ifadelerini azaltarak glukolipotoksik bir anti-enflamasyona neden oldu (Şekil 7).
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı besin-14-04808-g007.jpg'dir.
    Şekil 7
    MLE ve nCGA, NF-κB sinyalini inhibe ederek ve miR-34a azaltılmış lipogenez yoluyla SIRT1-AMPK yolunu düzenleyerek enflamasyonu azalttı.

    Git: 3. Tartışma

    NAYKH ve diyabetik steatohepatitli hastaların sayısı, metabolik sendromun artan prevalansı ile uyumlu olarak dünya çapında hızla artmaktadır. Metabolik sendrom, hipertansiyon, diyabet, hiperlipidemi ve obezite dahil olmak üzere bir grup durumla karakterize edilir; NAYKH için başlıca risk faktörleri. Diyabet, NAFLD'nin steatohepatite ilerlemesini, Mallory-Denk cisimcikleri, lobüler inflamasyon, hepatosit balonlaşma dejenerasyonu ve periselüler fibroz gibi histolojik bulgularla teşvik eder [ 24 ]. Ayrıca, steatohepatit siroz gibi daha ciddi bir forma ilerleyebilir veya karaciğer yetmezliği veya hepatoselüler karsinom nedeniyle potansiyel olarak karaciğerle ilişkili morbidite veya mortaliteye ilerleyebilir [ 25]. Bu nedenle lipogenezi ve inflamatuar yanıtları baskılayan yaklaşımların steatohepatit gelişimini önlemesi beklenir. Diyabetik steatohepatite özgü tedavilerdeki son gelişmelerle birlikte, klinik doktorların diyabetik steatohepatiti olan hastaları belirlemesi ve mümkün olan en iyi sonuçları elde etmek için entegre bir multidisipliner tedavi programı başlatması giderek daha önemli hale gelmektedir.

    Artan kanıtlar, miR'lerin steatohepatit patofizyolojisinde lipid homeostazı, oksidatif stres ve inflamatuar yanıtları içeren yolları düzenlediğini göstermektedir [ 22 , 26 ]. MiR-34a'nın NAYKH ve diyabetik steatohepatitte anahtar rol oynadığı düşünülmektedir. Yakın zamanda yapılan bir çalışma, hepatosit miR-34a'nın NAFLD'den steatohepatite ilerlemede önemli bir düzenleyici olduğunu bulmuştur [ 7 ]. Mekanik olarak, miR-34a'nın inhibe edilmesi, lipid birikimini ve apoptozu azaltarak steatohepatit gelişimini engelleyebilir. Bu nedenle, miR-34a'nın steatohepatiti çoklu yollardan etkilediği mekanizmaları araştırdık. miR-34a'nın aşağı regülasyonu, SIRT1, AMPK, PPARa ve çeşitli aşağı akış genlerinin aktivasyonuna yol açtı [ 21], ayrıca bir miR-34a inhibitörü ile tedavi, lipogenezin zayıflamasına ve steatohepatitin iyileşmesine katkıda bulunmuştur. SIRT1, hepatik lipid homeostazının başka bir düzenleyicisidir ve hepatik steatozda önemli bir rol oynar. Guo ve ark. metforminin steatohepatiti SIRT1'e bağlı bir şekilde hafiflettiğini bildirdi [ 27 ]. Başka bir çalışma, bir PPARα agonistinin, insülin duyarlılığını ve lipid metabolizmasını iyileştirebileceğini ve potansiyel olarak fibrozisi kötüleştirmeden steatohepatitin iyileşmesini sağlayabildiğini gösterdi [ 28 ]. Diğer veriler, Aridla kaybının, PPARa'yı aşağı doğru düzenleyerek NAFLD'yi arttırdığını, böylece yağ asidi oksidasyonunu bloke ettiğini ve lipogenez ve insülin direncine yol açtığını göstermiştir [ 29 , 30 ].]. Bu bulgular, MLE ve nCGA'nın miR-34a'yı doğrudan susturma ve SIRT1, AMPK ve PPARa transkripsiyon faktörlerini hedefleme etkisine sahip olduğunu gösterdiğimiz mevcut çalışma ile tutarlıdır. miR-34a'nın aşağı regülasyonu, hedefleri PPARa ve SIRT1'i düzenleyerek glukolipotoksisite kaynaklı steatohepatite karşı terapötik bir strateji olabilir.

    CPT-1 yolu, β-oksidasyonda çok önemli bir rol oynar ve PPARα ve CPT-1'in baskılanması nedeniyle mitokondriyal yağ asidi oksidasyonunun zayıflaması, steatohepatitin patogenezinde önemli bir olaydır [31 ] . Bu çalışmada, miR-34a'nın inhibisyonunun SIRT1/AMPK'yi aktive ettiğini ve CPT-1'in ekspresyonunu mitokondrinin β-oksidasyonuna yol açtığını bulduk. Bu gözlemler, miR-34a'nın inhibisyonundan sonra artan β-oksidasyonun glukolipotoksik kaynaklı steatohepatiti hafiflettiği mekanizmayı en azından kısmen açıklayabilir. Sonuçlarımız ayrıca AMPK'nin, MLE ve nCGA tedavisinden sonra yükselen CPT-1 düzeylerinin bir aracısı olduğunu gösterdi.

    Ek olarak, SREBP ailesinin, kolesterol ve trigliserit sentezi de dahil olmak üzere lipogenezde önemli bir rol oynadığı gösterilmiştir. Kalıcı SREBP aktivasyonunun steatohepatit ve ateroskleroz gelişimi ile sonuçlandığı gösterilmiştir [ 32 ]. Kim ve ark. endoplazmik retikulum stresinin kaspaz-2 aktivasyonu yoluyla lipogenezi ve steatohepatiti tetiklediğini ve bunun SREBP-1/2 ekspresyonunu indüklediğini bildirmiştir [ 33 ]. SREBP-1, FASN'nin ana transkripsiyonel düzenleyicisidir ve FASN'nin karşılık gelen protein seviyeleri, NAFLD'nin insan ve hayvan modellerinde rapor edilmiştir. Karaciğer hücrelerinde FASN ekspresyonu, NAYKH veya steatohepatitin erken evrelerinde telafi edici bir adaptasyon olarak düşünülebilir [ 32,34 ] .]. Ren ve ark. SREBP-2 ve HMG-CoAR ifadelerinin baskılanmasının diyabetik sıçanlarda NAFLD'yi azaltabileceğini bildirmiştir [ 35]. Birden fazla sinyal yolu, HMG-CoAR yolunu kontrol etmek ve kolesterol metabolizmasını düzenlemek için SREBP-2'nin aktivasyonunu teşvik edebilir. SREBP'ler, lipojenik gen ekspresyonunun patogenezindeki anahtar transkripsiyon faktörleri olduğundan, SREBP-1/2'nin lipid metabolizmasını düzenlemedeki etkilerini, FASN ve HMG-CoAR ekspresyonlarını hedefleyerek araştırdık. Verilerimiz, MLE ve nCGA tedavisinden sonra OH kaynaklı steatoz HepG2 hücrelerinde SREBP-1/2 ifadelerinin azaldığını gösterdi. Bu bulgular, steatohepatitte FASN ve HMG-CoAR'ın baskılanmasının, hepatositlerde aşırı trigliserit ve kolesterol sentezini önleyerek glukolipotoksisite kaynaklı steatohepatitin ilerlemesini sınırlamayı amaçlayan koruyucu pozitif düzenleyici geri besleme mekanizmasının önemli bir parçası olduğunu düşündürmektedir.

    Enflamasyonun steatohepatitte yer alması, transkripsiyonel düzenleyiciler olarak TNF-α/NF-κB/IL-6'nın hepatik ve adipoz inflamatuar yanıtları destekleyebileceğini ve hepatosit apoptozu ve nekrozu indükleyebileceğini düşündürmektedir. Hepatosit ve adipoz doku NF-κB bağlama aktiviteleri, hepatik hasarın büyüklüğü ile doğrudan ilişkiliydi ve NF-κB bağlanma aktivitesinin ve TNF-α gen ekspresyonunun düşürülmesi, steatohepatit gelişimini azaltabilir. Yakın tarihli bir çalışma, TNF-α/NF-κB sinyal aracılı makrofaj yolunun baskılanmasının, bir fare modelinde steatohepatiti hafifletebileceğini bildirmiştir [ 36 ]. Park ve ark. ayrıca NF-κB'nin aracılık ettiği hepatik inflamasyonun inhibisyonunun steatohepatite karşı koruyabileceğini göstermiştir [ 37]. Diğer veriler, IL-6'nın inflamasyon ve insülin direncinde rol oynayabileceğini, TNF-α'nın ise NAFLD'nin ilerlemesini indükleyebileceğini ve steatohepatit gelişimini destekleyebileceğini düşündürmektedir [ 38]. Ancak miR-34a mimik veya miR-34a inhibitörü ile tedavinin enflamasyonla ilişkili proteinlerin profilini değiştirmediğini de gözlemledik (veriler gösterilmemiştir). MLE veya nCGA, enflamatuar yolları modüle etmek için diğer mikroRNA'lardan etkilenebilir. Sonuçlarımız, MLE ve nCGA'nın glukolipotoksisite kaynaklı steatohepatiti iyileştirdiğini ve ayrıca bir hücre modelinde TNF-a/NF-κB/IL-6 sinyal yolunun anti-inflamatuar etkilerine katkıda bulunduğunu gösterdi. Tip 2 diyabetli ve steatohepatitli hastaların yönetiminde, erken teşhis ve stea-tohepatite özgül tedavi ile başlayan, disiplinler arası bir yaklaşımın gerekli olduğuna inanıyoruz.

    Önceki çalışmamızda, MLE'nin lipid sentezi ve oksidasyonunun moleküler mekanizmaları yoluyla NAFLD'yi iyileştirmek için kullanılabileceğini gösterdik [ 20 ]. MLE'de bulunan polifenolik bileşikler izole edilmiş ve tanımlanmış ve üç CGA izomeri, yani nCGA, Crp ve CGA açısından zengin olduğu bulunmuştur. Bu çalışmada, diğer iki CGA izomeri ile karşılaştırıldığında nCGA'nın lipid birikimi üzerinde en güçlü hafifletme etkisine sahip olduğunu bulduk. Bu, nCGA'nın miR-34a/SIRT1/AMPK yolunu modüle ederek diyabetik steatohepatiti hafifleten MLE'nin ana fonksiyonel bileşeni olduğunu düşündürür.

    Sonuçlarımız, MLE ve nCGA'nın lipogenez ve iltihaplanma ile ters ilişkileri yoluyla glukolipotoksik kaynaklı steatohepatite karşı koruma sağlayabileceğini desteklemektedir. SIRT1/AMPK yolunun aktivasyonuna yol açan miR-34a'nın aşağı regülasyonu ve ardından lipogenez ve lipid β-oksidasyon enzimlerinin ifadelerinin modülasyonu ve ayrıca SREBP-1, SREBP- dahil olmak üzere lipogenez ile ilişkili transkripsiyon faktörleri dahil olmak üzere çeşitli mekanizmalar dahil edilmiştir. 2, FASN ve HMG-CoAR ve NF-κB ve TNF-α ile ilişkili sinyallemenin inhibisyonu yoluyla inflamatuar yanıtların zayıflaması.

    Git: 4. Malzemeler ve Yöntemler

    4.1. Kimyasallar ve tepkimeler

    Dulbecco'nun değiştirilmiş Eagle ortamı (DMEM), L-glutamin, penisilin-streptomisin karışık antibiyotikler, fetal sığır serumu (FBS), tripsin-EDTA ve fosfat tamponlu salin (PBS), Gibco/BRL'den (Gaithersburg, MD, ABD) satın alınmıştır. . SREBP-1, SREBP-2, HMG-CoAR (HMGCR; sc-271595), AMPK (sc-74461), CPTI (sc-20669) ve PPARa'ya (sc-9000) karşı birincil antikorlar, Santa Cruz'dan (Santa) elde edildi. Cruz, CA, ABD). Fosfor-AMPK (#2535), FASN (#3180) ve a-tubuline karşı monoklonal antikorlar, Cell Signaling Technology Inc'den (Beverly, MA, ABD) elde edildi. 4.2. MLE ve CGA İzomerlerinin Hazırlanması

    MLE solüsyonu ddH20 ile 50 mg/mL'lik bir stok konsantrasyonuna hazırlandı ve daha sonra sonraki deneylerde kullanılmak üzere 0.22 um'lik bir filtreden süzüldü. CGA, Crp ve nCGA, 100 mM'lik bir konsantrasyona sahip bir stok solüsyonu hazırlamak için dimetilsülfoksit (DMSO) içerisinde çözündürüldü ve daha sonra sonraki deneyler için gerektiği gibi seyreltildi. 4.3. Hücre kültürü

    İnsan hepatom hücre hattı HepG2, 1 mM streptomisin/penisilin (Gibco BRL Co., Gaithersburg, MD, ABD), %10 FBS (Gibco BRL Co., Gaithersburg, MD, ABD), 2 mM L-glutamin içeren DMEM içinde büyütüldü (Gibco BRL Co., Gaithersburg, MD, ABD) ve 1 mM sodyum piruvat (Hyclone, GE Healthcare, Pittsburg, PA, ABD) 37 °C'de, %95 nemde ve %5 CO2'de yetersiz muhafaza edilmiş ve hücreler American Type Culture Collection'dan (ATCC, Manassas, VA, ABD) elde edildi.

    Daha önceki çalışmalara göre, oleik asidin durumu (OA, 300 uM) lipogenezi ve yağ asidi oksidasyonunu indüklemek için kullanılmıştır [ 39 ]. Bu nedenle, bir glukolipotoksisite modeli oluşturmak için sonraki deneyler için OA (300 uM) ve yüksek glikozu (25 mM) birlikte tedavi ettik. 4.4. Hücre Canlılığı Testi

    HepG2 hücreleri (oyuk başına 7 x 10⁴ ) , 24 saat boyunca 24 oyuklu plakalara ekilmiştir. MLE ve üç CGA izomeri (CGA, Crp, nCGA) daha sonra 24 ve 48 saat boyunca farklı konsantrasyonlarda ilave edildi. Hücreler, iki kez PBS ile yıkandı ve kültür ortamı, 4 saat boyunca MTT (0.5 mg/mL) içeren ortam ile değiştirildi. Kültür ortamı daha sonra çıkarıldı ve oluşan formazan kristallerini çözmek için 1 mL izopropanol eklendi. Hücre canlılığı, 563 nm dalga boyuna sahip bir ELISA okuyucu kullanılarak analiz edildi. 4.5. Nil Kırmızısı Analizi

    Nil kırmızısı, hücre içi lipitleri tespit edebilen lipofilik bir floresan boyadır [ 40 ]. HepG2 hücreleri, aşırı lipid birikimini indüklemek ve diyabetik steatohepatit gelişimini simüle etmek için OH ortamı ile muamele edildi ve farklı konsantrasyonlarda MLE ve nCGA ile muamele edildi. 24 saat sonra hücreler tripsin ile ayrıldı ve 3 kez PBS ile yıkandı. 30 dakika boyunca Nil kırmızısı (1 ug/mL) ilave edildi, ardından hücreler PBS ile yıkandı ve akış sitometrisi ile ölçüldü. Hücre içi lipid içeriği daha sonra FACScan ve CellQuestTM Pro yazılımı (Becton Dickinson Bioscience, San Jose, CA, ABD) kullanılarak analiz edildi. 4.6. miRNA Ekstraksiyonu ve Gerçek Zamanlı PCR

    HepG2 hücrelerinin toplam RNA'sı, üreticinin protokolüne göre NucleoZOL reaktifi (Macherey-Nagel, Duren, Almanya) kullanılarak toplandı. RNA, cDNA'ya çevrildi ve ardından bir TaqMan® MicroRNA Ters Transkripsiyon Kiti (Applied Biosystems, Carlsbad, CA, ABD) kullanılarak kantitatif gerçek zamanlı (qRT) PCR gerçekleştirildi . Her numunede, PCR sonuçları endojen kontrol RNU6B'ye göre normalleştirildi. Tedavi edilen hücrelerdeki MiR-34a ifade seviyeleri, Light Cycler yazılımı kullanılarak işlenmemiş kontrollerle karşılaştırıldı. 4.7. Hücre Transfeksiyonu

    HepG2 hücreleri 6 cm'lik bir tabağa ekildi ve 24 saatlik inkübasyondan sonra ortam, %10 FBS içeren antibiyotik içermeyen ortamla değiştirildi. Hücreler, üreticinin protokolüne göre özel bir TOOLS Su DNA'sı, RNA ekstraksiyon kiti (Biotools Co., Ltd., New Taipei, Tayvan) ve RNA sistemi kullanılarak transfekte edildi. miR-34a inhibitörü (5'-ACAACCAGCUAAGACACUGCCA-3') ve miR-34a mimik (5'-UGGCAGUGUCUUACCCUGG UUGU-3') serumsuz ortama eklendi ve daha sonra T-Pro lipozomal olmayan transfeksiyon solüsyonu ile karıştırıldı. Oda sıcaklığında 15 dk. Karışım, 6 cm'lik kabın her bir oyuğuna eklendi ve 24 saat inkübe edildi. Transfeksiyon etkinliğini doğrulamak için miRNA ifadesindeki değişiklikler qRT-PCR ile tespit edildi. 4.8. Batı İmmunoblotlama

    Toplam hücre lizatları, eşit hacimde RIPA tamponu ile karıştırıldı, ardından 10 dakika ısıtıldı, %8-12 sodyum dodesil sülfat poliakrilamid jel elektroforezi (SDS-PAGE) kullanılarak analiz edildi ve bir nitroselüloz membrana (Millipore, Bedford, MA, AMERİKA BİRLEŞİK DEVLETLERİ). Lekeler, bloke edici tamponda (PBS içinde %5 yağsız süt) 1 saat boyunca yavaş çalkalanarak reaksiyona sokuldu, gece boyunca 4 °C'de proteine ​​özgü birincil antikorlarla problandı, Tris Tamponlu Salin Tamponu ve Tween 20 (TBST) ile yıkandı ve sonra inkübe edildi oda sıcaklığında 1 saat boyunca peroksidaz konjuge sekonder antikorlarla. Son olarak, antijen-antikor kompleksleri, geliştirilmiş kemilüminesans (ECL) leke saptama reaktifleri (Amersham Biosciences, Mountain View, CA, ABD) kullanılarak geliştirildi. Bağıl görüntü yoğunluğu, bir Fuji LAS-3000 görüntüleme sistemi (FUJFILM, Tokyo, Japonya) kullanılarak analiz edildi. 4.9. İstatistiksel analiz

    Her gruptaki deneyler üç kez tekrarlandı ve sonuçlar ortalama ± standart sapma (ortalama ± SD) olarak gösterildi. Sonuçlar GraphPad Prism 7 yazılımı (GraphPad Software, San Diego, CA, ABD) kullanılarak çizildi ve ardından Student's t -testi ile analiz edildi. Tek yönlü varyans analizi kullanıldı, ardından gruplar arasındaki farkları analiz etmek için Duncan'ın çoklu aralık testi kullanıldı. İstatistiksel analiz SPSS v22.0 (IBM Inc., Armonk, NY, ABD) kullanılarak yapıldı. p değerinin < 0,05 olması anlamlı bir fark olarak kabul edildi.

    Git: Finansman Tablosu

    Bu çalışma Chung Shan Medical University Hospital, Taichung, Tayvan (CSH-2020-C-019 ve CSH-2022-P-003) ve Bilim ve Teknoloji Bakanlığı Hibesi (MOST 110-2320-B-) tarafından desteklenmiştir. 040-010-). Dijital Görüntü Analiz Cihazı, Bilim ve Teknoloji Bakanlığı, Milli Eğitim Bakanlığı ve Tayvan Chung Shan Tıp Üniversitesi Hastanesi tarafından desteklenen Chung Shan Tıp Üniversitesi Alet Merkezinde gerçekleştirildi.

    Git: Yazar Katkıları

    T.-YY ve M.-HY deneyleri gerçekleştirmiş ve sonuçlarını özetlemiş; T.-YY ve C.-CH, deneylerin sürecine yardımcı oldu; Verilerin yorumlanmasında Y.-LW, C.-CH ve C.-SC'nin katılımı; K.-CC ve C.-JW süpervizyon sağladı ve makaleyi yazdı. Tüm yazarlar makalenin yayınlanan versiyonunu okudu ve kabul etti.

    Git: Kurumsal İnceleme Kurulu Beyanı

    Uygulanamaz.

    Git: Bilgilendirilmiş Onam Beyanı

    Uygulanamaz.

    Git: Veri Kullanılabilirliği Bildirimi

    Uygulanamaz.

    Git: Çıkar çatışmaları

    Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

    Git: Dipnotlar


    Yayıncının Notu: MDPI, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


    Git: Referanslar

    1. Chalasani N., Younossi Z., Lavine JE, Charlton M., Cusi K., Rinella M., Harrison SA, Brunt EM, Sanyal AJ Alkolsüz yağlı karaciğer hastalığının teşhisi ve yönetimi: Amerikan Derneği'nden uygulama kılavuzu Karaciğer Hastalıkları Çalışması. hepatoloji 2018; 67 :328–357. doi: 10.1002/hep.29367. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    2. Robertson RP, Harmon J., Tran POT, Poitout V. tip 2 diyabette β-hücre glukoz toksisitesi, lipotoksisite ve kronik oksidatif stres. Diyabet. 2004; 53 :S119–S124. doi: 10.2337/diabetes.53.2007.S119. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    3. Lambert JE, Ramos-Roman MA, Browning JD, Parks EJ Artan de novo lipogenez, alkolsüz yağlı karaciğer hastalığı olan bireylerin belirgin bir özelliğidir. Gastroenteroloji. 2014; 146 :726–735. doi: 10.1053/j.gastro.2013.11.049. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    4. Das S., Mohamed IN, Teoh SL, Thevaraj T., Ku Ahmad Nasir KN, Zawawi A., Salim HH, Zhou DK Mikro-RNA ve metabolik sendromun özellikleri: Bir anlatım incelemesi. Mini Rev.Med. kimya 2020; 20 :626–635. doi: 10.2174/1389557520666200122124445. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    5. Aryal B., Singh AK, Rotllan N., Price N., Fernández-Hernando C. MikroRNA'lar ve lipid metabolizması. Curr. görüş. Lipidol. 2017; 28 :273. doi: 10.1097/MOL.0000000000000420. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    6. Xu Y., Zalzala M., Xu J., Li Y., Yin L., Zhang Y. A metabolik stress-indüklenebilir miR-34a-HNF4α yolu, lipid ve lipoprotein metabolizmasını düzenler. Nat. komün. 2015; 6 :7466. doi: 10.1038/ncomms8466. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    7. Xu Y., Zhu Y., Hu S., Pan X., Bawa FC, Wang HH, Wang DQ-H., Yin L., Zhang Y. Hepatosit miR-34a, gelişme ve ilerlemede kilit bir düzenleyicidir Alkole bağlı olmayan yağlı karaciğer hastalığı. Mol. Metab. 2021; 51 :101244. doi: 10.1016/j.molmet.2021.101244. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    8. Sud N., Zhang H., Pan K., Cheng X., Cui J., Su Q. Yüksek fruktoz diyetiyle indüklenen mikroRNA'nın anormal ifadesi: Hiperlipidemi ve hepatik insülin direncinin patogenezindeki çıkarımlar. J. Nutr. biyokimya 2017; 43 :125–131. doi: 10.1016/j.jnutbio.2017.02.003. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    9. Horton JD, Shah NA, Warrington JA, Anderson NN, Park SW, Brown MS, Goldstein JL Transgenik ve nakavt farelerden alınan oligonükleotit mikrodizi verilerinin birleşik analizi, doğrudan SREBP hedef genlerini tanımlar. Proc. Natl. Acad. bilim AMERİKA BİRLEŞİK DEVLETLERİ. 2003; 100 :12027–12032. doi: 10.1073/pnas.1534923100. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    10. Liu S., Gao Y., Zhang L., Yin Y., Zhang W. Rspo1/Rspo3-LGR4 sinyali, AMPKa-SREBP2 yoluyla hepatik kolesterol sentezini inhibe eder. FASEB J.2020; 34 :14946–14959. doi: 10.1096/fj.202001234R. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    11. Price NL, Gomes AP, Ling AJ, Duarte FV, Martin-Montalvo A., North BJ, Agarwal B., Ye L., Ramadori G., Teodoro JS SIRT1, AMPK aktivasyonu ve resveratrolün faydalı etkileri için gereklidir. mitokondriyal fonksiyon. Hücre Metab. 2012; 15 :675–690. doi: 10.1016/j.cmet.2012.04.003. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    12. Serviddio G., Bellanti F., Vendemiale G. Tıp için serbest radikal biyoloji: Alkolsüz yağlı karaciğer hastalığından öğrenme. Özgür. radikal. Biol. Med. 2013; 65 :952–968. doi: 10.1016/j.freeradbiomed.2013.08.174. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    13. Chyau C.-C., Wang H.-F., Zhang W.-J., Chen C.-C., Huang S.-H., Chang C.-C., Peng RY Antrodan, yüksek- AMPK/Sirt1/SREBP- 1c /PPARγ yolu ile C57BL/6 fare modelinde yağ ve yüksek fruktozlu diyete bağlı yağlı karaciğer hastalığı . Int. J. Mol. bilim 2020; 21 :360. doi: 10.3390/ijms21010360. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    14. Wang Q., Liu S., Zhai A., Zhang B., Tian G. Fosforilasyon yoluyla lipit metabolizmasının AMPK aracılı düzenlenmesi. Biol. eczane Boğa. 2018; 41 :985–993. doi: 10.1248/bpb.b17-00724. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    15. İskender H., Dokumacıoğlu E., Saral S., Yenice G., Sevim Ç. Yüksek Fruktozla Beslenmiş Sıçanların Karaciğer ve Böbreklerindeki NF-κB, TNF-α ve IL-6 Düzeyleri. Int. J. Res. eczane Biyomed. bilim 2018; 18 :1–7. tarih: 10.9734/JAMPS/2018/44823. [ CrossRef ] [ Google Akademik ]
    16. Baker RG, Hayden MS, Ghosh S. NF-κB, inflamasyon ve metabolik hastalık. Hücre Metab. 2011; 13 :11–22. doi: 10.1016/j.cmet.2010.12.008. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    17. Jin K., Liu Y., Shi Y., Zhang H., Sun Y., Zhangyuan G., Wang F., Yu W., Wang J., Tao X. PTPROt, NF-κB aktivasyonunu artırarak iltihabı şiddetlendirir alkolsüz steatohepatit sırasında karaciğer makrofajlarında. teranostik. 2020; 10 :5290. doi: 10.7150/thno.42658. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    18. Gryn-Rynko A., Bazylak G., Olszewska-Slonina D. Beyaz dut ( Morus alba L.) yapraklarından elde edilen yeni potansiyel fitoterapötikler . Biyomed. Eczacı. 2016; 84 :628–636. doi: 10.1016/j.biopha.2016.09.081. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    19. Zhang D.-Y., Wan Y., Hao J.-Y., Hu R.-Z., Chen C., Yao X.-H., Zhao W.-G., Liu Z.-Y ., Li L. Doğu Çin'deki farklı ekim alanlarından çeşitli dut çeşitlerinin alkaloid, polifenoller ve antioksidan içeriklerinin değerlendirilmesi. End. Mahsul. Üretim 2018; 122 :298–307. doi: 10.1016/j.indcrop.2018.05.065. [ CrossRef ] [ Google Akademik ]
    20. Yu M.-H., Hung T.-W., Wang C.-C., Wu S.-W., Yang T.-W., Yang C.-Y., Tseng T.-H. , Wang C.-J. Neoklorojenik Asit, In Vitro miR-34a'yı Düzenleyerek Hepatik Lipid Birikmesini ve Enflamasyonu Azaltır. Int. J. Mol. bilim 2021; 22 :13163. doi: 10.3390/ijms222313163. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    21. Ding J., Li M., Wan X., Jin X., Chen S., Yu C., Li Y. Alkolsüz yağlı karaciğer hastalığında PPARa ekspresyonunu hedefleyerek miR-34a'nın yağlanmayı düzenlemedeki etkisi. bilim 2015 ; 5 :13729. doi: 10.1038/srep13729. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    22. Lin H.-Y., Yang Y.-L., Wang P.-W., Wang F.-S., Huang Y.-H. NAFLD'de mikroRNA'ların ortaya çıkan rolü: Oksidatif stres, iltihaplanma ve ötesini modüle etmede mikroRNA-29a'nın vurgulanması. hücreler. 2020; 9 :1041. doi: 10.3390/cells9041041. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    23. Hart M., Rheinheimer S., Leidinger P., Backes C., Menegatti J., Fehlmann T., Grässer F., Keller A., ​​Meese E. Birleşik ağ tabanlı miR-34a-hedef etkileşimlerinin tanımlanması ve deneysel yaklaşım. Oncotarget. 2016; 7 :34288. doi: 10.18632/oncotarget.9103. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    24. Takahashi Y., Fukusato T. Alkolsüz yağlı karaciğer hastalığı/alkolik olmayan steatohepatitin histopatolojisi. Dünya J. Gastroenterol. WJG. 2014; 20 :15539. doi: 10.3748/wjg.v20.i42.15539. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    25. Cohen JC, Horton JD, Hobbs HH İnsan yağlı karaciğer hastalığı: Eski sorular ve yeni görüşler. Bilim. 2011; 332 :1519–1523. doi: 10.1126/science.1204265. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    26. Gjorgjieva M., Sobolewski C., Dolicka D., de Sousa MC, Foti M. miRNA'lar ve NAFLD: Patofizyolojiden terapiye. Bağırsak. 2019; 68 :2065–2079. doi: 10.1136/gutjnl-2018-318146. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    27. Guo W.-R., Liu J., Cheng L.-D., Liu Z.-Y., Zheng X.-B., Liang H., Xu F. Metformin, Diyetle Uyarılan Obez Farelerde Steatohepatiti Hafifletiyor SIRT1'e Bağımlı Bir Şekilde. Ön. Eczane. 2021; 12 :704112. doi: 10.3389/fphar.2021.704112. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    28. Ratziu V., Harrison SA, Francque S., Bedossa P., Lehert P., Serfaty L., Romero-Gomez M., Boursier J., Abdelmalek M., Caldwell S. Elafibranor, an agonist of the peroxisome proliferator -aktive edilmiş reseptör −α ve −δ, fibroz kötüleşmeden alkolsüz steatohepatitin çözülmesini indükler. Gastroenteroloji. 2016; 150 :1147–1159. doi: 10.1053/j.gastro.2016.01.038. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    29. Qu Y.-L., Deng C.-H., Luo Q., Shang X.-Y., Wu J.-X., Shi Y., Han Z.-G. Arid1a, PPARa aracılı yağ asidi oksidasyonu yoluyla hepatik steatoz ve insülin direncine karşı koruma sağlar. bioRxiv. 2019:507517. doi: 10.1101/507517. [ CrossRef ] [ Google Akademik ]
    30. Bougarne N., Weyers B., Desmet SJ, Deckers J., Ray DW, Staels B., De Bosscher K. PPAR α'nın lipid metabolizması ve inflamasyonda moleküler etkileri. Endokrin Rev. 2018; 39 :760–802. doi: 10.1210/er.2018-00064. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    31. Cong W.-N., Tao R.-Y., Tian J.-Y., Liu G.-T., Ye F. Obezite ve insülin direncinin eşlik ettiği alkolsüz yeni bir steatohepatit modelinin kurulması fareler. Hayat Bilimi 2008; 82 :983–990. doi: 10.1016/j.lfs.2008.01.022. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    32. Moslehi A., Hamidi-Zad Z. Karaciğer hastalıklarında SREBP'lerin rolü: Bir mini inceleme. J. Clin. çeviri Hepatol. 2018; 6 :332. doi: 10.14218/JCTH.2017.00061. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    33. Kim JY, Garcia-Carbonell R., Yamachika S., Zhao P., Dhar D., Loomba R., Kaufman RJ, Saltiel AR, Karin M. ER stresi, S1P'nin kaspaz-2 aktivasyonu yoluyla lipogenezi ve steatohepatiti yönlendirir. Hücre. 2018; 175 :133–145. doi: 10.1016/j.cell.2018.08.020. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    34. Dorn C., Riener M.-O., Kirovski G., Saugpier M., Steib K., Weiss TS, Gäbele E., Kristiansen G., Hartmann A., Hellerbrand C. Alkolsüz yağ asidi sentazının ifadesi Karaciğer yağlanması hastalığı. Int. J. Clin. Tecrübe. Pathol. 2010; 3 :505. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    35. Ren R., Gong J., Zhao Y., Zhuang X., Ye Y., Lin W. Enteromorpha prolifera kaynaklı sülfatlanmış polisakkaritler, SREBP-2 ve HMG-CoA redüktaz ekspresyonunu baskılar ve neden olduğu alkolsüz yağlı karaciğer hastalığını azaltır. yüksek yağlı bir diyet. Gıda İşlevi. 2017; 8 :1899–1904. doi: 10.1039/C7FO00103G. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    36. Zhou W., Zhu Z., Xiao X., Li C., Zhang L., Dang Y., Ge G., Ji G., Zhu M., Xu H. Jiangzhi Granule, alkolsüz steatohepatiti baskılayarak zayıflatır TNF/NFκB sinyal yolu-ağ farmakolojisine dayalı bir çalışma. Biyomed. Eczacı. 2021; 143 :112181. doi: 10.1016/j.biopha.2021.112181. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    37. Park HJ, Lee J.-Y., Chung M.-Y., Park Y.-K., Bower AM, Koo SI, Giardina C., Bruno RS alkolik olmayan steatohepatit ile indüklenmiş obez sıçanlar. J. Nutr. 2012; 142 :57–63. doi: 10.3945/jn.111.148544. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    38. Fontes-Cal TC, Mattos RT, Medeiros NI, Pinto BF, Belchior-Bezerra M., Roque-Souza B., Dutra WO, Ferrari TC, Vidigal PV, Faria LC Plazma Sitokinleri Arasında Çapraz Konuşma, Enflamasyon ve Karaciğer Hasarı olarak NAFLD İlerlemesini İzlemek İçin Yeni Bir Strateji. Ön. immünol. 2021; 12 :708959. doi: 10.3389/fimmu.2021.708959. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    39. Shi L., Karrar E., Wang X. Sesamol, PPAR sinyal yolu yoluyla hepatoz HepG2 hücrelerinde hepatik lipid birikimini ve oksidatif stresi iyileştirir. J. Gıda Biyokimyası. 2021; 45 :e13976. doi: 10.1111/jfbc.13976. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    40. Greenspan P., Mayer EP, Fowler SD Nil kırmızısı: Hücre içi lipid damlacıkları için seçici bir floresan lekesi. J. Hücre Biol. 1985; 100 :965–973. doi: 10.1083/jcb.100.3.965. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

    Yorum yap

    Hazırlanıyor...
    X