Duyuru

Collapse
No announcement yet.

Turp, Rettisch, Raphanus sativus var. niger
Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Turp, Rettisch, Raphanus sativus var. niger


    Turp, Rettisch, Raphanus sativus var. niger
    Siyah Turp
    Familyası: Turpgillerden, Kreuzblütler, Brassiceae
    Drugları: Turp köküRaphani sativi radix
    Turpun genelikle yumru şeklindeki kökü sebze gibi yenir, salatalara katılır ve suyu çıkarılarak içilir.

    Giriş: Turpun takriben 10 türü mevcuttur, fakat bunlardan genelikle kara turp tedavide kulanılır ve diğerleri ise yenir. Kara Turp latince raphanus sativus var. niger, kırmızı turpa latince raphanus sativus var. radicula ve yabani turpa ise latince raphanus sativus var. istrum diye anılır. Kara turp tarihte 2. Ramses tarafından piramitleri yapan işcilere soğanve sarımsakla birlikte dinç ve sağlıklı kalmaları için verildiği bilinmektedir. Günümüzde ilk klinik araştırmaları ve sarımsakla birlikte dinç ve sağlıklı kalmaları için verildiği bilinmektedir. Günümüzde ilk klinik araştırmaları 1935?de K. Eimer ve H. Heinrich vede 1938?de W. Golder ve ekipleri tarafından yapılmiştır. Vatanının doğu Akdeniz ülkeleri veya Türkistan olduğu tahmin edilmekte olan bu bitki günümüzde hemen hemen dünyanın her yerinde yetişmektedir.

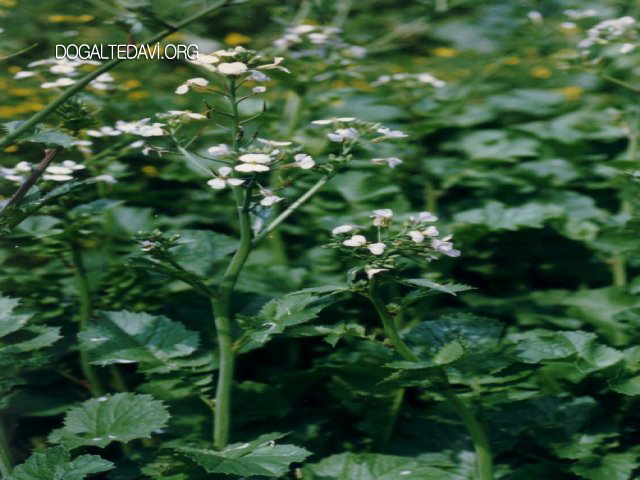
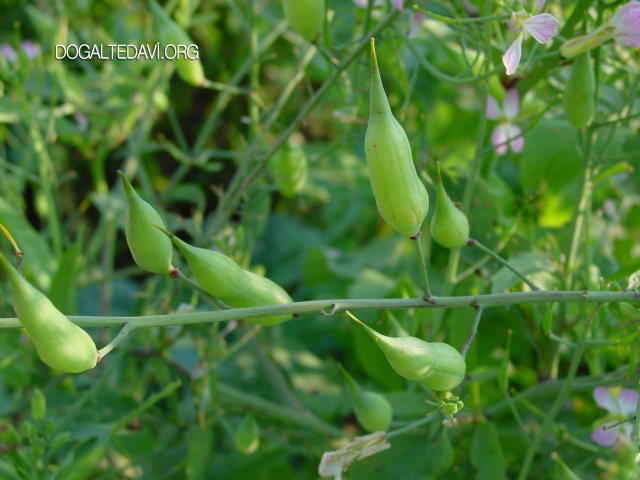
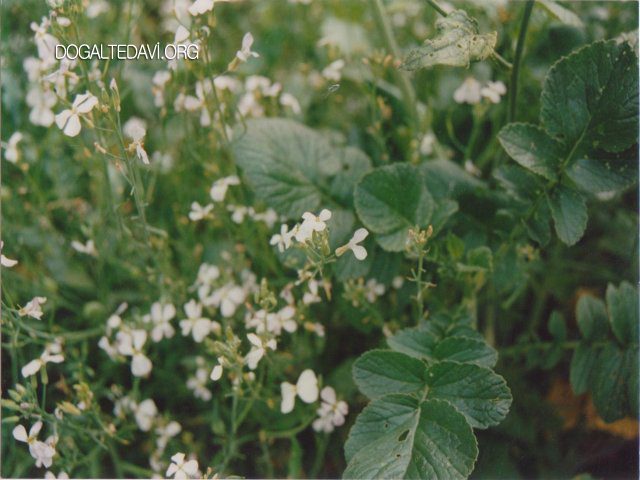
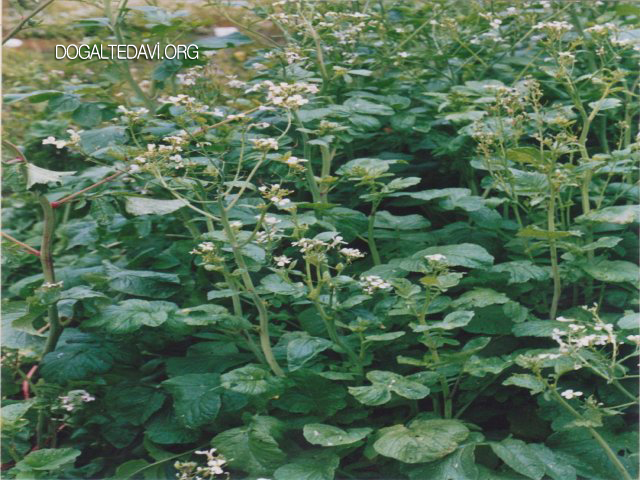
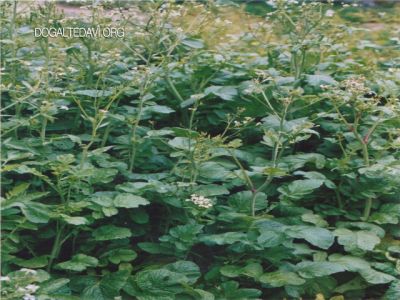
    Botanik: Turp 40-100sm boyunda bir veya iki yıllık bir bitki olup, gövdesi yuvarlak ve tüysüzdür. Yaprakları kanat şeklinde olup her kanat 5-11 yaprakcıktan meydana gelir ve kanar yaprakların ucundaki yaprakcıklar büyükcedir. Yaprakcıkların kenarları kertikli, üzeri pörtüklü ve koyu yeşil renklidir. Çiçeklerin raç yaprakları15-25 mm uzunluğunda ters yumurta şeklinde , beyaz veya açık morumsu renkte genelikle dört adettir. Ve kupa yaprakları 6-10 mm uzunluğunda vede mızrak şeklindedir. Kökleri küre şeklinde 5-20 sm çapında üzeri ağ şeklinde dışı siyah içi bayaz ve acımsı bir tadı vardır.

    Yetiştirilmesi: Bir kültür bitkisi olan turp nemli ve sulu olan hemen her yerde yetiştirmek mümkündür.

    Hasat zamanı: Sonbaharda olgunlaşan küre şeklindeki kökler yıkanır, kurutulur ve serin bir yerde muhafaza edilir.

    Birleşiminde: Birleşimindeki maddeleri önemine göre şöyle sıralıyabiliriz.
    a-) Glukosinolatlar (hardalyağglikozitler) : Glucobrassicin (3-indolyl-metiler), 4-metil -3-butenylglucosinolat, allylizotiosiyanat, glucophanin , butiltiosiyanat (butil-hardalyağı) ve allylhardalyağı içeir.
    b-) C,B1, B2-Vitaminler ve beta-karotin
    c-) Ayrıca raphanol ve raphanin içerir

    Araştırmalar: Almanyanın güneyinde yaşayanların kuzeyindekilere göre çok az karaciğer ve safra rahatsızlıklarına yakalandıkları gözlenmiştir. Bunun nedeni yapılan araştırmalarda güneylilerindah çok turp yedikleri bu nedenlede daha az rahatsızlandıkları görülmüştür.
    1-) Asıl klinik araştırmaları 1935?de K. Eimer, H. Heinrich ve ekipleri sindirim rahatsızlıkları olan 29 hasta üzerinde 3-4 hafta süren tedavi denemeleri yapmışlardır. Hastalar günde 100 ml turp suyu vermişlerdir ve tedavi sonucunda hastaların safraakışının düzeldiği ve safra krampını önlediği tesbit edilmiştir.
    2-) W. Golder ve ekibi 1938de 40 hastası üzerinde tedavi denemesi yapılmıştır. Bu tedavi denemesinde hastaların safra akışları düzelmiş ve safra krmapı normaleşmiştir. (h.h.b.4.358)

    Tesirşekli: iştah acıcı, hazmetirici, safra ve idrar söktürücü, karaciğeri kuvvetlendirici ve mikropları öldürücüdür

    Kulanılması:
    a-) Araştırmalara göre: Hastanın durumuna göre 2-16 hafta süreyle nünde 100 ml turp suyu içildiğinde safra yollerını açıldığı ve safra akışını artırdığı görülmüştür.
    b-) Homeopatide: Safra rahatsızlıkları, bağırsak kokuşması, zayıflama, boğazağrısı ve uyuyamamaya karşı kulanılır.
    c-) Halkarasında: Sindirim rahatsızlıkları, iştahsızlık, safra ve karaciğer zafiyeti, öksürük, bronşit ve gripe karşı kulanılır.

    Turpsuyu: Turp sıkılarak günde 100 ml 2-4 hafta süreyle içilir, şayet turp suyu buzdolabında 2-3 saat bekletilirse acısı pek kalmaz.

    Turpşerbeti: Turpun içi oyularak içine bal konur ve turp 6-10 saat buzdolabında bekletldikten sonra önce bal sonra turp yenir. Bir başka metot ise 100 ml turpsuyuna iki yemek kaşığı bal ile karıştırıldıktan sonra 2-4 saat buzdolabında bekletildikten sonra içilebilir.

    Turpsalatası: Turp soyulduktan sonra dilim dilim kesilir veya rendelenerek sade olarak veya diğer salatalara karıştırılarak yenir.

    Yantesiri: Midesi çok hassas olanların aşırı turp yemesi veya turp suyu içmesi halinde mide rahatsızlığı yapabilir. Karaciğer ve safra rahatsızlıklarına karşı elbetteki daha etkili bitkiler mevcuttur ve bunların başında devedikeni tohumu-, şahtere-, kırlangıçotu-, civanpercemiotu preparatları veya Gökçek İksiri gelir.
    Bağırsak florası ve kılcal kan dolaşımı sağlıklı yaşayabilmek için çok önemlidir. Çünkü vitamin, mineral, aminoasit, enzim, glikoz, vb, besleyici maddenin hazırlanması, hücrelere ulaşması ve de mikroplarla mücadele eden makrofaj, T ve B- Hücreleri gibi savunma mekanizmalarının hücre aralarında dolaşması buna bağlıdır.Gökçek İksir'i ile tedavi olmak mümkündür. Tabii doğru beslenirseniz tedavi sürecide o oranda kısalır.Gökçek İksiri vücudu cüruflardan arıtır, iltihaplı hastalıkları iyileştirir ve bağışıklık sistemini güçlendirir.Gökçek Tonik mide-bağırsak rahatsızlıkları, deri hastalıkları ve her türlü alerjiye karşı etkilidir.

    Asla peynir yememeli, çünkü asidoza ve iltihaplanmaya sebep olur.Siyah çay, kahve ve kola içilmemeli, çünkü bağırsakları kurutur ve vitamin, mineral ve aminoasitlerin alımını (absorbesini) önler.Alkol ve sigaranın zararları belli kanser, damarların yağlanması vb, artı uzun süre bira içilirse cinsel ikdidarsızlık ve hatta kısırlığa sebep olmaktadır.Sucuk salam sosis gibi et mamullerine 5-6 ay ara vermek gerekir (sade temiz et az yenilebilir) çünkü asidoza sebep olmaktadır.Bu da birçok hastalığın ana kaynağıdır.Akşam yemeği yerine yoğurt, meyve veya salata yenilebilir veya sebze çorbası içilebilir.Hayvansal besinler, patates, tahıl (beyaz pirinç), bakliyat ve hamurlu yiyecekler, özelikle de tatlılar akşam yenirse tam sindirilmez ve zamanla problemlere sebep olur.Ne kadar beyaz pirinç, patates, hamurlu yiyecekler, tatlı yiyecek ve içecekler, o kadar yağ oluşturur.Çünkü nişasta glikoza (şekere) dönüşür, şekerde yağa dönüşerek vücutta depolanır.Şeker ve antibiyotikler bağırsak mantarları çoğaltır, mantarlar ise her türlü hastalığı tetikler.Tatlı deyince akıla baklava, çikolata, dondurma vs gelir, kavun, karpuz ve üzümde tatlıdır ve bunlarda mantarı tetikler, çünkü aşırı şeker içeriler.Gökçek Diyet
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2
    Turptan gelen antifungal bitki defensin RsAFP2, Candida albicans'ta metakaspazdan bağımsız bir şekilde apoptozu indükler

    Bir M. Aerts,Didac Carmona-Gutierrez,Sophie Lefevre,Gilmer Govaert,Isabelle EJA François,Frank Madeo,Renata Santos,Bruno PA Cammue,Karin Thevissen
    İlk yayınlanan:11 Temmuz 2009

    https://doi.org/10.1016/j.febslet.2009.07.004

    Soyut
    Turptan elde edilen mantar önleyici bitki defensin Raphanus sativus mantar önleyici protein 2'nin (RsAFP2) apoptozu indüklediğini ve eş zamanlı olarak insan patojeni Candida albicans'ta kaspazların veya kaspaz benzeri proteazların aktivasyonunu tetiklediğini gösterdik . Ayrıca, C. albicans'ta bildirilen tek (varsayılan) kaspazı kodlayan C. albicans metakaspaz 1'in silinmesinin , kaspaz aktivasyonunu apoptotik uyarıcı asetik asit tarafından önemli ölçüde etkilediğini, ancak RsAFP2 tarafından değil. Bildiğimiz kadarıyla bu, bu patojende bir defensin tarafından eş zamanlı kaspaz aktivasyonu ile apoptoz indüksiyonu üzerine ilk rapordur. Ayrıca, verilerimiz en az iki farklı tipte kaspaz veya kaspaz benzeri proteazların varlığına işaret etmektedir.C. albicans .1. Giriş


    Bitki defensinleri, mantar önleyici ve bazı durumlarda antibakteriyel aktiviteye sahip olan küçük, bazik, sistein açısından zengin peptitlerdir ( [ 1 , 2 ] 'de gözden geçirilmiştir ). Bitki defensinleri sadece fitopatojenik mantarlara karşı değil, aynı zamanda fırıncı mayası ve insan patojenik mantarlarına ( Candida albicans gibi ) karşı da aktiftir. Ayrıca, insan ve bitki hücreleri için toksik değildirler ve yeni antimikotikler olarak terapötik potansiyellerini vurgularlar [ 3 ] .

    Turp tohumlarından ( R. sativus ) [ 4 ] izole edilen bir bitki defensini olan Raphanus sativus antifungal protein 2'nin (RsAFP2) duyarlı mantar ve maya türlerinin plazma membranındaki sfingolipid glukosilseramid (GlcCer) ile etkileşime girdiğini daha önce göstermiştik [ 5 ] . Bu etkileşim hücrenin daha sonra geçirgenleşmesine ve hücre büyümesinin durmasına yol açar [ 6 ] . Saccharomyces cerevisiae ve Candida glabrata [ _ 7 ] veya yapısal olarak değiştirilmiş bir seramid parçasına sahip GlcCer'den oluşan [ 8 ] RsAFP2 ile indüklenen membran geçirgenliğine ve hücre ölümüne dirençlidir [ 5 , 9 ] . Ayrıca, RsAFP2, C. albicans'ta endojen reaktif oksijen türlerini (ROS) indükler , ancak GlcCer'den yoksun bir RsAFP2-dirençli C. albicans gcsΔ / Δ mutantında değil. ROS birikimi, apoptoza giren maya hücrelerinin fenotipik belirteçlerinden biridir [ 11 ] .

    Bu çalışmada, RsAFP2'nin C. albicans'ta apoptozu indüklediğini gösterdik . Ayrıca, RsAFP2 tedavisi, metakaspaz Ca Mca1p'den bağımsız olan kaspazların aktivasyonu ile sonuçlanır.

    2 Malzemeler ve yöntemler
    2.1 Malzemeler ve mikroorganizmalar
    RsAFP2 daha önce tarif edildiği gibi izole edildi [ 4 ] . Bu çalışmada kullanılan maya suşları Candida albicans suşu CAI4 [ 12 ] , BWP17 [ 13 ] , BWP17 mca1 Δ/Δ ( mca1 Δ:: FRT / mca1 Δ:: FRT ) ve BWP17 mca1 Δ/Δ- MCA1 ( mca1 Δ: ) : FRT / mca1 Δ:: MCA1 - SAT1 - ÇEVİRME ). Kullanılan ortamlar YPD ve PDB/YPD'dir [ 5 ] .

    2.2 İstatistiksel analiz

    İstatistiksel analiz, eşleştirilmiş T -testi kullanılarak yapıldı .

    2.3 C. albicans mca1 Δ/Δ mutantının ve CaMCA1 tamamlayıcı C. albicans mca1 Δ/Δ mutantının oluşturulması


    C. albicans mca1 Δ/Δ mutantı, URA3 flipper kaseti [ 14 ] kullanılarak oluşturulmuştur , bkz . Ek veriler ve Ek Şekil 1 .

    2.4 Antifungal aktivite testi


    YPD'de katlanarak büyüyen C. albicans kültürleri (OD 600 = 2 x 10⁷ hücre/ml), 80 uM karbobenzoksi-valil-alanil-aspartil-[O-metil varlığında veya yokluğunda 10 ug/mL RsAFP2 veya su ile inkübe edildi. PDB/YPD büyüme ortamında ]-florometilketon (z-VAD-FMK) kaspaz inhibitörü (Promega, Madison, WI, ABD). 30 °C'de 0 saat ve 2 saat 30 dakikalık inkübasyondan sonra, 100 uL alikuotlar YPD plakalarına kaplandı ve 30 °C'de 2 günlük inkübasyondan sonra koloni oluşturan birimler (CFU'lar) sayıldı. Yüzde öldürme, suyla işlem görmüş kontrollere kıyasla RsAFP2 ile işlemden sonra CFU sayısının oranına göre hesaplandı. Veriler, her biri tekrarlanan ölçümlerden oluşan üç bağımsız deneyin ortalamasıdır.

    2.5 Maya apoptoz analizleri

    YPD'de (OD 600 = 2) katlanarak büyüyen C. albicans kültürleri, 10 µg/mL RsAFP2 veya PDB/YPD içindeki su ile 30 °C'de 2 saat 30 dakika süreyle inkübe edildi. Yüzde öldürme, YPD agar plakaları üzerinde 500 hücrelik koloni oluşumunun analiz edildiği kaplama deneyleri gerçekleştirilerek belirlendi. ROS seviyeleri, fosfatidilserin dışsallaştırması ve maya kültürlerinin DNA fragmantasyonu ( ölçüm başına n = 500 hücre; metinde sunulan değerler üçlü ölçümlerin ortalamasıdır) dahil olmak üzere apoptotik belirteçler, dihidroetidyum (DHE), FITC etiketli annexin V ile boyama yoluyla görselleştirildi daha önce açıklandığı gibi sırasıyla propidium iyodür ve TUNEL ile kombinasyon halinde [ 11 ]. Görüntü alımı için bir floresan mikroskobu (Axioskop 2; Zeiss), bir dijital kamera (Spot RT-SE; Diagnostic Instruments Inc.) ve MetaMorph yazılımı (sürüm 6.2r4; Universal Imaging Corp.) kullanıldı. Farklı tedaviler için pozitif hücre yüzdesi, toplam hücre sayısına (yani 500) göre hesaplanmıştır ve üç bağımsız deneyin ortalamasıdır.

    2.6 Kaspaz aktivitesi


    YPD'de (OD 600 = 0.5) katlanarak büyüyen C. albicans kültürleri, 120 mM asetik asit veya 80 µg/mL üridin, 80 µg/mL arginin ve 40 µg/mL histidin ile desteklenen YPD pH3.0'da su ile 2 için inkübe edildi. h 30 °C'de; veya YPD'deki (OD 600 = 2.0) C. albicans kültürleri, 10 µg/mL RsAFP2 veya PDB/YPD içindeki su ile 30 °C'de 2 saat 30 dakika süreyle inkübe edildi. Kaspaz aktivitesi, CaspACE FITC-VAD-FMK In Situ Marker (Promega) kullanılarak ölçüldü [ 15 ]bir floresan mikroskobu (model Axio Imager Z1), bir dijital kamera (model Axio Cam Mrm) ve Axio Vision Rel. 4.6 yazılım. Farklı tedaviler için kaspaz aktif hücre yüzdesi, toplam hücre sayısına (yani 500) göre hesaplandı ve üç bağımsız deneyin ortalamasıdır.

    3. Sonuçlar
    3.1 RsAFP2, C. albicans'ta apoptozu indükler

    Şiddetli öldürme, yüksek nekrotik maya popülasyonu ile sonuçlandığından, mayada apoptoz en iyi şekilde oldukça yüksek hayatta kalma oranlarında incelenir [ 16 ] . Duyarlı mantarların 50–100 μg/ml RsAFP2 ile tedavisinin spesifik olmayan membran geçirgenliği ile sonuçlandığını, daha düşük RsAFP2 dozları, yani 5–20 μg/ml RsAFP2 ile tedavinin GlcCer aracılı membran geçirgenliği ile sonuçlandığını daha önce göstermiştik [ 6 ] . Bu nedenle, bu çalışmada oldukça düşük RsAFP2 konsantrasyonları, yani 1–30 µg/ml kullandık. İlk olarak C. albicans'ta öldürme yüzdesini ve ROS birikimini belirledik .Farklı inkübasyon süreleri için (1 saat ila 16 saat arasında değişen) PDB/YPD büyüme ortamında farklı RsAFP2 konsantrasyonları (1 μg/mL ila 30 μg/mL arasında değişen) ile muameleden sonra CAI4 kültürleri. Üstel olarak büyüyen C. albicans CAI4 kültürlerinin 10 μg/mL RsAFP2 ile PDB/YPD'de 2 saat 30 dakika muamelesi, kaplama deneylerinde ( Şekil 1 A) ve endojen ROS birikiminde (görselleştirilmiş) gösterildiği gibi yaklaşık %30 öldürme ile sonuçlandı . DHE tarafından, Şekil 1 B). RsAFP2 inkübasyon süresinin arttırılması, C. albicans'ın öldürme yüzdesini veya RsAFP2 tarafından ROS birikimini önemli ölçüde etkilemedi ( Ek Şekil 2). RsAFP2 ile indüklenen hücre ölümünün apoptotik yapıda olup olmadığını netleştirmek için, aynı kültürler, DNA fragmantasyonu (deoksinükleotidiltransferaz aracılı dUTP çentik ucu etiketleme (TUNEL) testi ile görselleştirildi) ve fosfatidilserin (PS) dahil olmak üzere diğer apoptotik belirteçler için değerlendirildi. iç yaprakçıktan plazma zarının hücre dışı tarafına translokasyon. Apoptotik ve nekrotik ölüm arasında ayrım yapmak için PS translokasyonu ve membran bütünlüğü kaybı eş zamanlı olarak analiz edildi (FITC etiketli annexin V ve propidium iyodür (PI) ile birlikte boyama yoluyla görselleştirildi) [ 11 , 15 ]. RsAFP2 ile muamele edilmiş kültürler, artan ROS ve DNA parçalanma seviyeleri ve suyla muamele edilmiş kültürlere kıyasla fazla anneksin V pozitif/PI negatif hücreler ile karakterize edildi ( Şekil 1 B). Mayadaki apoptoz, bir süre sonra otomatik olarak ikincil nekroza yol açar [ 16 , 17 ] . Nekrotik hücreleri (yani %1.4 ± %0.3) temsil eden annexin V negatif/PI pozitif ('yalnızca PI') hücrelerin miktarı yakl. RsAFP2 işleminden sonra anneksin V pozitif/PI negatif hücrelerin miktarından 5 kat daha düşük (yani %6.1 ± %0.8), bu da RsAFP2 tarafından indüklenen C. albicans CAI4 kültürünün baskın apoptotik hücre ölümünü gösterir. C. albicans miktarınınRsAFP2 tedavisi üzerine apoptotik belirteçler sergileyen hücreler (yaklaşık %5-10), daha önce C. albicans'ta apoptotik uyarıcı asetat, peroksit ve farnesol için bildirildiği gibi, tipik olarak RsAFP2 tarafından indüklenen ölü hücre sayısının (yaklaşık %30) altındadır. [ 16 - 18 ] . Ancak, RsAFP2'nin ek apoptozdan bağımsız mekanizma(lar) yoluyla C. albicans'ta hücre ölümünü indüklediği göz ardı edilemez . şekil görüntü Şekil 1
    Şekil görüntüleyicide açPriz
    RsAFP2, C. albicans'ta apoptozu indükler . C. albicans CAI4 kültürleri 10 µg/mL RsAFP2 veya PDB/YPD büyüme ortamında 2 saat 30 dakika su ile muamele edildi. (A) RsAFP2 ile muamele edilmiş hücreler ve suyla muamele edilmiş hücrelerin öldürme yüzdesi (koloni oluşumu; %100 kaplanmış hücrelerin sayısını temsil eder). Veriler ortalamaları temsil eder ± SEM ∗ P < 0.05. (B) RsAFP2 ile muamele edilmiş (gri çubuklar) ve suyla muamele edilmiş C. albicans'ın apoptotik özelliklerikültürler (beyaz çubuklar), DHE boyama yoluyla endojen ROS seviyeleri, TUNEL boyama yoluyla DNA fragmantasyonu ve annexinV/propidium iyodür birlikte boyama yoluyla fosfatidilserin dışsallaştırma ve membran bütünlüğü belirlenerek değerlendirildi. Her deneyde, floresan mikroskopisi kullanılarak 500 hücre değerlendirildi (%100, hücre sayısını temsil eder, yani 500). Değerler, üçlü ölçümlerin ortalamasıdır. Veriler ortalamaları temsil eder ± SEM ∗∗ P < 0.01.

    3.2 RsAFP2 kaynaklı apoptotik hücre ölümü, kaspaz aktivasyonunu içerir

    S. cerevisiae'de , maya kaspazı Yca1p, apoptozun önemli bir oyuncusudur. C. albicans'ta , varsayılan bir kaspaz, son zamanlarda hidrojen peroksit tarafından oksidatif stres kaynaklı hücre ölümünde rol oynadığı gösterilen metakaspaz 1 ( CaMCA1 ) (orf19.5995) tarafından kodlanır [ 19 ] . RsAFP2 tedavisi üzerine C. albicans'ta olası bir kaspaz aktivasyonunu netleştirmek için , katlanarak büyüyen C. albicans CAI4 kültürleri, 2 saat 30 dakika boyunca 10 μg/mL RsAFP2 ile işleme tabi tutuldu ve ardından pancaspase inhibitörü z'nin FITC etiketli analoğu ile inkübe edildi. -VAD-FMK, mayada kaspazların aktif bölgesine bağlanır [ 15 ]. RsAFP2 tedavisi, suyla işlenmiş kontrol kültürlerine (%1.3 ± 0.1) kıyasla floresan hücre sayısında (%5.1 ± %0.8) bir artışa yol açtı, bu da RsAFP2'nin kaspaz aktivasyonunu indüklediğini gösterir.

    RsAFP2 antifungal aktivitesinde aktif kaspazların katılımını incelemek için, üstel olarak büyüyen C. albicans CAI4 kültürleri, 80 μM pankaspaz inhibitörü z- varlığında veya yokluğunda 2 saat 30 dakika boyunca PDB/YPD içinde 10 μg/mL RsAFP2 ile tedavi edildi. VAD-FMK [ 15 ] . RsAFP2'nin kaspaz inhibitörü ile birlikte inkübasyonu, RsAFP2 ile indüklenen C. albicans öldürülmesini tamamen bloke etti : hem RsAFP2 hem de kaspaz inhibitörü ile tedavi edilen C. albicans kültürünün hayatta kalması %99 ± 7 iken, sadece RsAFP2 ile tedavi edilen kültürün hayatta kalması 71 ± %4. Tüm bu veriler, kaspaz aktivitesine bağlı olan bir RsAFP2 antifungal mekanizma moduna işaret eder.

    3.3 C. albicans metakaspaz 1 ( Ca Mca1p), RsAFP2'nin neden olduğu hücre ölümünde yer almaz

    RsAFP2'nin neden olduğu hücre ölümü sırasında kaspaz aktivitesini tespit ettikten sonra , C. albicans'ta bildirilen tek (varsayılan) kaspaz olan Ca Mca1p'nin apoptotik sürecinde potansiyel bir rolü araştırdık . Bu amaçla, URA3 flipper kasetini ( Ek veriler ) kullanarak BWP17 suşunda bir C. albicans CaMCA1 homozigoz silme mutantı ( mca1 Δ/Δ mutantı) oluşturduk . CaMCA1'in silinmesini biyokimyasal düzeyde kontrol etmenin bir yolu olarak , C. albicans mca1 Δ/Δ mutantında asetik asit tarafından indüklenen kaspaz aktivitesinin olmadığını doğruladık . Asetik asidin daha önce C. albicans'ta apoptozu indüklediği gösterilmişti. [ 16 , 17 ] ve S. cerevisiae'de kaspaz bağımlı apoptoz [ 20 ] . C. albicans vahşi tip BWP17 suşunun 2 saat boyunca 120 mM asetik asit ile işlenmesi kaspaz aktivasyonu ile sonuçlanırken ( Şekil 2 ) C. albicans mca1 Δ/Δ mutant kültürlerinin 120 mM asetik asit ile işlenmesi önemli ölçüde daha düşük sonuç verdi kaspaz aktivasyonu. Bu veriler, C. albicans'ta apoptotik uyarıcı asetik asit tarafından tetiklenen genel kaspaz aktivasyonunda Ca Mca1p'nin önemli katkısına işaret etmektedir . şekil görüntü şekil 2
    Şekil görüntüleyicide açPriz
    C. albicans metakaspaz 1, RsAFP2'nin neden olduğu hücre ölümüne dahil değildir. İzojenik suşlar C. albicans BWP17 (beyaz çubuk), karşılık gelen C. albicans mca1 Δ/Δ mutantı (siyah çubuk) ve CaMCA1 tamamlayıcı C. albicans mca1 Δ/Δ mutantı (gri çubuk) aktif kaspazlarına sahip hücrelerin yüzdesi 2 saat 120 mM asetik asitle veya 2 saat 30 dakika 10 µg/mL RsAFP2 ile işleme tabi tutulduktan sonra (%100 hücre sayısını temsil eder, yani 500). Değerler, üçlü ölçümlerin ortalamasıdır. Veriler ortalamaları temsil eder ± SEM ∗ P < 0.05.
    Ca Mca1p'nin C. albicans'ta RsAFP2 ile indüklenen apoptozda da yer alıp almadığını araştırmak için , daha sonra RsAFP2 tedavisi üzerine öldürme yüzdesini ve C. albicans mca1 Δ/Δ mutant kültürünün RsAFP2 ile indüklenen kaspaz aktivasyonunu değerlendirdik ve bunu kültür ile karşılaştırdık. İzojenik C. albicans BWP17 ve CaMCA1 tamamlayıcı C. albicans mca1 Δ/Δ mutantlarının RsAFP2 duyarlılığı ve RsAFP2 ile indüklenen kaspaz aktivasyonu . C. albicans mca1 Δ /Δ mutantı, BWP17 veya CaMCA1 tamamlayıcı C. albicans mca1'in tedavisi10 μg/mL RsAFP2 ile 2 saat 30 dakika boyunca Δ/Δ mutant kültürleri, üç suşun hepsinin RsAFP2 tarafından eşit şekilde öldürülmesiyle sonuçlandı (üç suşun tümü için %30 ile %40 arasında öldürme). Ayrıca, RsAFP2 tedavisi üzerine aktive kaspazlara sahip hücrelerin yüzdesi, bu 3 suş arasında önemli ölçüde farklılık göstermedi ( Şekil 2 ). Bu veriler, C. albicans mca1 Δ/Δ mutantının (i) RsAFP2'ye eşit derecede duyarlı olduğunu ve (ii) izogenik ebeveyn suşu BWP17 ve CaMCA1 tamamlayıcı C. albicans mca1 Δ ile karşılaştırıldığında benzer bir RsAFP2 ile indüklenen kaspaz aktivasyonu gösterdiğini gösterir. /Δ mutantı.

    4. Tartışma

    RsAFP2'nin C. albicans üzerindeki antifungal aktivitesinin, mayada apoptozun fenotipik belirteçlerinden biri olan ROS oluşumunun [ 10 ] indüksiyonunu içerdiğini daha önce göstermiştik [ 11 , 17 ] . Bu çalışmada, RsAFP2'nin gerçekten de C. albicans'ta apoptotik hücre ölümünü indüklediğini ve eş zamanlı olarak kaspaz aktivasyonunu tetiklediğini gösterdik. Ayrıca, kaspaz inhibitörü z-VAD-FMK, C. albicans'ın RsAFP2 ile indüklenen öldürülmesini hafifletti, RsAFP2'nin antifungal etki modunda aktif kaspazlar veya kaspaz benzeri proteazlar için önemli rolü gösterir. Bildiğimiz kadarıyla, bu, bu patojende apoptotik hücre ölümüne neden olan bir defensinin ilk çalışmasıdır, böylece defensinlerin insan patojeni C. albicans'a karşı etki şekline dair yeni mekanik anlayışlar sağlar . RsAFP2'nin ek apoptozdan bağımsız mekanizma(lar) yoluyla C. albicans'ta hücre ölümünü indüklediğinin göz ardı edilemeyeceğine dikkat edin .

    C. albicans'ta apoptozu indüklediği daha önce gösterilmiş olan bileşikler veya uyaranlar asetik asit [ 17 ] , hidrojen peroksit [ 17 ] , polien amfoterisin B [ 17 ] , 1,10-fenantrolin metal kompleksleri [ 21 ] , gümüş-kumarindir. kompleksler [ 22 ] , dialil disülfid [ 23 ] , y-glutamilsistein sentazın bozulması [ 24 ] veya farnesol [ 18 ] . Son zamanlarda, Andrés ve iş arkadaşları apoptotik hücre ölümünü gösterdiler.C. albicans , memelilerin mukoza salgılarında bulunan ve antifungal ve antibakteriyel aktiviteye sahip bir protein olan laktoferrin ile [ 25 ] . C. albicans metakaspaz 1'in ( Ca Mca1p) bu uyaranlar tarafından apoptoz indüksiyonuna katılımı, hidrojen peroksit için ancak son zamanlarda tanımlanmıştır [ 19 ] .

    C. albicans'ta RsAFP2 tarafından indüklenen kaspaz bağlantılı apoptotik hücre ölümünün altında yatan moleküler mekanizmalar hakkında daha fazla bilgi edinmek için , bu süreçte metakaspaz 1'in ( Ca Mca1p) katılımını değerlendirdik. C. albicans metacaspaz 1'in asetik asit tarafından indüklenen kaspaz aktivasyonu için önemli olduğunu gösterdik . Buna karşılık, C. albicans'ta RsAFP2 ile indüklenen apoptotik hücre ölümü , aktif kaspazlara bağlıdır, ancak C. albicans metakaspaz 1'den bağımsızdır, bu da C'de (bir) diğer henüz tanımlanmamış kaspaz(lar)ın veya kaspaz benzeri proteazın varlığını gösterir . albicans _ Sonuç olarak, bu, farklı apoptotik yolların (farklı kaspazları içeren) indüklenebileceği anlamına gelebilir.C. albicans , apoptotik uyarana bağlı olarak. Aslında, metakaspaz Ca Mca1p'yi kodlayan gen, hidrojen peroksit [ 19 ] ve asetik asit (bu çalışma) tarafından indüklenen kaspaz aktivasyonu için önemliyken, RsAFP2 ile kaspazların aktivasyonunu etkilemez. S. cerevisiae'de , Yca1p'den bağımsız apoptotik hücre ölümüne katılan çeşitli kaspaz benzeri proteazlar, yani Kex1 proteaz [ 26 ] ve Esp1 proteaz [ 27 ] tanımlanmıştır . Bu kaspaz benzeri proteazların, C. albicans'ta RsAFP2 ile indüklenen Mca1p'den bağımsız apoptozda yer alıp almadığı daha fazla araştırılmalıdır.

    Sonuç olarak, bu çalışma, C. albicans'ta apoptozu indükleyen bir antifungal defensinin ilk kanıtını sunmaktadır . Böylece, C. albicans enfeksiyonlarının tedavisi için genel olarak bitki defensinlerini ve özel olarak RsAFP2'yi içeren olası tıbbi uygulamalara ışık tutar . Bu bağlamda, RsAFP2'nin son zamanlarda murin kandidiyazisine karşı profilaktik olarak etkili olduğu kanıtlanmıştır ve bu en azından antimikotik flukonazol ile aynı ölçüde [ 28 ] .

    Teşekkür

    Bu çalışma FWO-Vlaanderen (BPAC'a Araştırma Projesi G.0440.07) tarafından desteklenmiştir. Her ikisi de KU Leuven'den AMA'ya (Araştırma Konseyi) ve KT'ye (Endüstriyel Araştırma Bulundu) doktora sonrası burslar için ve IWT-Vlaanderen'den GG'ye doktora bursu için minnettarız. CaMCA1 bozulması için kullanılan plazmitleri bize sağladığı için J. Morschhäuser'e (Universität Würzburg, Almanya) teşekkür ederiz . FM ve DCG, “Lipotoksisite” ve S-9304-B05 hibeleri için DFG'ye ve FWF'ye minnettardır.

    Ek AA

    Bu makaleyle ilgili ek veriler çevrimiçi sürümde doi:10.1016/j.febslet.2009.07.004 adresinde bulunabilir .

    Yorum yap


    • #3
      Turp defensinleri RsAFP1 ve RsAFP2, kaspofungin ile sinerjik olarak etki eder.Candida albicansbiyofilmler

      Yazar bağlantıları bindirme panelini açarKim Vriens bir1Tanne L.Soğutur1Peta J. HarveybDavid J. CraikbAnnabel BraemcJozef VleugelscBarbara DeConinck veBruno PA Cammue ve KarinThevissen ve
      https://doi.org/10.1016/j.peptides.2015.11.001Hakları ve içeriği alın Öne Çıkanlar

      • RsAFP1 ve RsAFP2, Candida albicans biyofilmlerine karşı kaspofungin ile sinerjik olarak hareket eder. • RsAFP2, bitki defensinlerinin tipik sistein stabilize αβ-motifini benimser. • RsAFP1 ve RsAFP2 antifungal/antibiyofilm aktivitesi ve kaspofungin ile sinerji oluşturma potansiyeli birbirinden bağımsızdır. Soyut

      Turp defensin RsAFP2, daha önce Candida albicans dahil olmak üzere çeşitli bitki patojenik mantarlarına ve insan patojenlerine karşı güçlü antifungal aktiviteye sahip bir peptit olarak karakterize edildi . RsAFP2 apoptozu indükler ve C. albicans'ta mayadan hipha geçişini bozar . Mayadan hiphaya geçişin olgun biyofilmlere ilerleme için önemli olduğu düşünüldüğünden , Pichia pastoris'te heterolog olarak eksprese edilen rekombinant (r)RsAFP2'nin potansiyel antibiyofilm aktivitesini analiz ettik.C. albicansbiyofilmler. rRsAFP2'nin 1.65 ± 0.40 mg/mL'lik bir BIC-2 ( yani , biyofilm oluşumunu kontrol tedavisine kıyasla %50 oranında engelleyen minimum rRsAFP2 konsantrasyonu) ile C. albicans biyofilm oluşumunu önlediğini bulduk . Ayrıca, 2.5 μg/mL ila 10 kadar düşük rRsAFP2 dozları arasında biyofilme özgü sinerjistik etkiler gözlendi . μg/mL ve antimikotikler kaspofungin ve amfoterisin B, yeni bir antibiyofilm bileşiği olarak RsAFP2'nin potansiyeline işaret ediyor. Ek olarak, rRsAFP2'nin çözelti yapısını karakterize ettik ve bunu turp tohumlarında bulunan başka bir defensin olan RsAFP1 ile karşılaştırdık. Bu peptitler, iki amino asit dışında benzer amino asit dizilerine sahiptir, ancak rRsAFP2, planktonik ve biyofilm kültürlerine karşı RsAFP1'den daha güçlüdür. İlginç bir şekilde, rRsAFP2 durumunda olduğu gibi, RsAFP1 de kaspofungin ile C. albicans'a karşı sinerjistik olarak hareket eder.rRsAFP2 ile karşılaştırılabilir bir düşük doz aralığında biyofilmler. Her iki defensinin NMR analizi yoluyla yapısal bir karşılaştırması, rRsAFP2'nin de bitki defensinlerinin tipik sistein stabilize αβ-motifini benimsediğini ortaya koydu, ancak bu peptitler arasında, farklı antifungal/antibiyofilm potensleriyle sonuçlanabilecek hiçbir yapısal farklılık bulunmadı. Bu ayrıca, RsAFP1 ve rRsAFP2'nin korunmuş yapısının antimikotiklerle sinerji oluşturma potansiyeline sahip olduğunu göstermektedir.C. albicansbiyofilmler.

      Yorum yap

      Hazırlanıyor...
      X