Duyuru

Collapse
No announcement yet.

Ardıç, Wacholder, Juniperus communis

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Ardıç, Wacholder, Juniperus communis

    ARDIÇ KOZALAĞI


    Ağaç | 3-10 m | 4-5 Aylar | Ca, Ho, Na | Kozalakları, Eter yağı

    Ardıç, Wacholder, Juniperus communis L.
    Bıldırcın Ardıcı Hakiki Ardıç
    Kuvvet Ardıcı Şifalı Ardıç
    Kudret Ardıcı

    Familyası: Selvigillerden, Zpressengwâchse, Cupressaceae

    Drugları: Ardıç kozalağı; Juniperi fructus
    Ardıç yağı; Juniperi aetheroleum
    Ardıç’ın meyveleri (kozalağı) Eterik yağı (kısaca yağı), çay, tentür ve natürel ilaç yapımında ve de Eterik yağı ise aroma tedavisinde kullanılır.

    Giriş: Servigillerin bir alt grubu olan Juniperusgillere takriben 60 Ardıç türü dahildir. Ardıçgilleri (Juniperiusgiller) 3 önemli ana gruba ayrılırlar;
    1) Oxycedrusgiller, buna örnek Şifalı Ardıç’ı gösterebiliriz. 2) Caryocedrusgiller, buna örnek olarak Juniperuis drupacea’yı gösterebiliriz ve 3) Sabinagiller, buna da örnek olarak Kara ağacı gösterebiliriz. Bunlardan Sabinagillerin çok zehirli olması nedeni ile bu grubu Kara Ardıç bahsinde ayrıca işleyeceğiz. Hakiki Ardıcın ayrıca bir düzine alt türü vardır. İşte bundan en önemlileri;
    a) Cüce Ardıç (Türk Ardıcı); J.Comminus ssp.nana Bu tür genellikle Kuzey Anadolu dağlarında yetişir. Birde Alp Cüce Ardıcı; J.C.ssp.Alpina vardır. Bu türde genellikle Alplerde yetişir. Ayrıca İspanya Ardıcı; J.C.ssp.Hemisphaeria, Japon Ardıcı; J.C.ssp.Nipponika, Amerika Ardıcı; J.c:ssp.Despressa ve Çin Ardıcı; J.C.ssp.Communis, Cüce Ardıç; J.C.ssp.Nana ve Katran Ardıcı; J.Oxycedrus Türkiye’de yetişir ve Hakiki Ardıç Trakya Cüce Ardıç Kuzey Anadolu ve Katran Ardıcı Toros’larda yetişir. Ardıç meyveleri çok eskiden beri böbrekleri yıkayıcı olarak ve ödeme karşı kullanılmıştır.

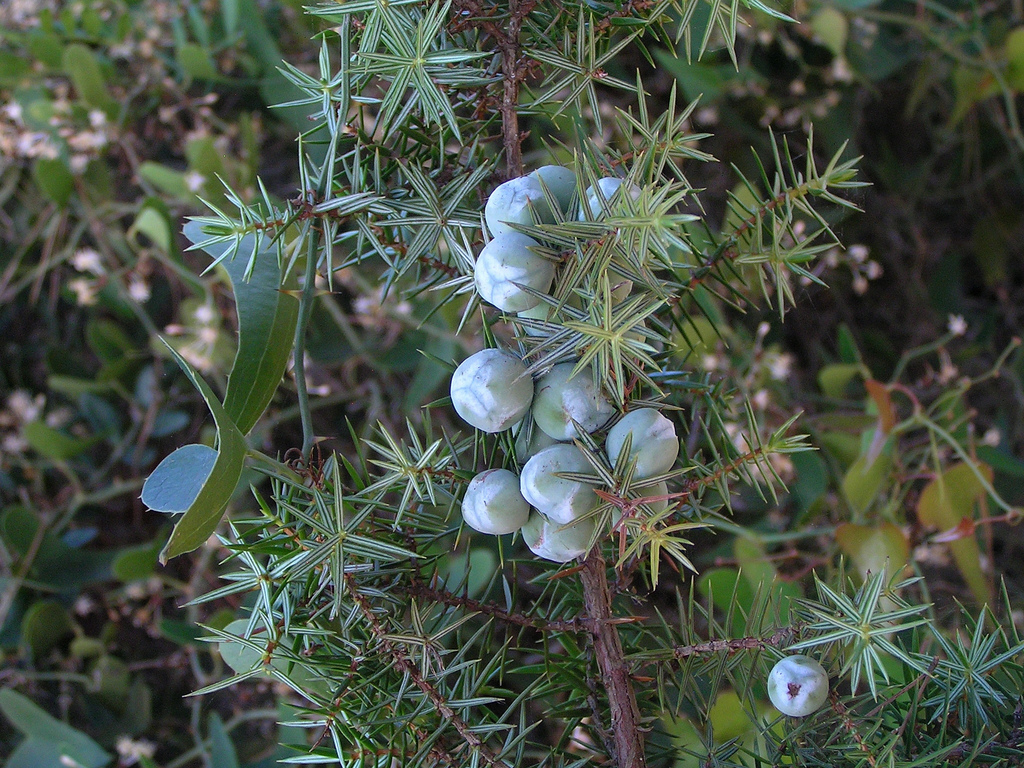
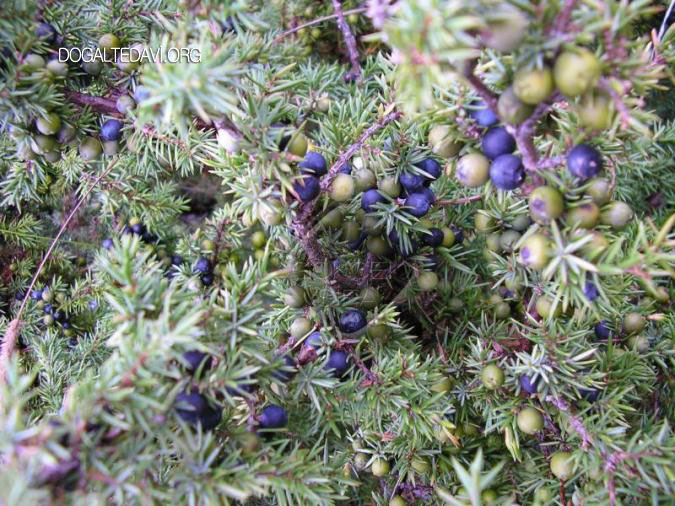
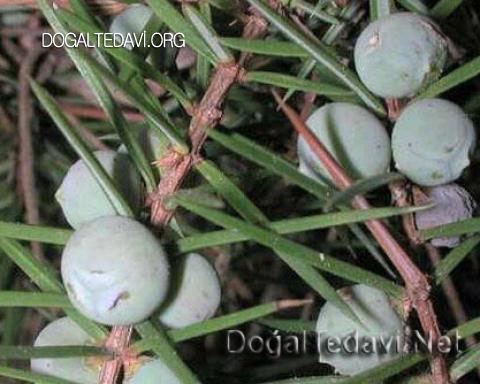
    Botanik: Ardıç çalı veya ağaç şeklinde tek veya çok gövdeli 3-10 m yük-sekliğinde, geriden piramidimsi üst kısmı ve orta taç görünümündedir. Yaprakları 20 mm uzunluğunda 2 mm genişliğinde ucu sivri iğne gibi veya küt, dalların uç kısmında üçlü ve dörtlü şekilde dizilmiştir. Erkek ve dişi çiçekleri ayrı ayrı ağaçlarda olduğu gibi aynı bitkide de olabilir ve çiçekleri üçlü pul şeklinde çokça yaprakçıktan oluşur. dişi çiçeklerin döllenmesi ile birlikte küçük meyve şeklindeki kozalakları meydana gelir ve bunlar olgunlaştığında siyahımsı kahverengi veya morumsu renkte, 0,5-1 cm çapında küre şeklinde ve genellikle topluca bir arada olur.

    Yetiştirilmesi: Fidanları veya çeltikleri güneye bakan yönlere ekilir, büyüyerek kozalak vermesi yıllar alabilir.

    Hasat zamanı: Eylül ortalarından Ekim sonlarına kadar Ardıç kozalakları toplanır, toplanması zor olduğundan Ardıç dibine bez serilerek kozalakları dökülür ve dökülen kozalaklar eski iğne yapraklarından ayıklanır ve sonra kurutulur. Kurutulan Ardıç kozalakları özel kaplarda muhafaza edilir. Ardıç kozalaklarının olgunlaşması iki yıl sürer, olgunlaşan siyahımsı esmer veya morumsu kozalakların yanında yeşil renkli bir yılık olgunlaşmamış kozalaklarda olabilir, bunlarında ayıklanması gerekir.

    Birleşimi: Ardıç kozalağının birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Eterik yağlar %0,5-2,5 arasında olup en önemleri; α-Pinen %34, B-Myrcen %11, θ-Muurden %10, Sabinen %7,5, Limonen %3, Elemen %2,9, B-Caryophyllen %2,7, α-Cadinen %2,5, B-Pinen %2,5 ve Terpinen %2,1 içerir.
    b) Proanthocyanidinler (Proantosiyanidinler); (+)-Afzelechin, (+)-Catechin (Kateşin), (-)-Epiafzelechin, (-)-Epicatechin, (-)-Epigallocatechin ve (+)-Gallocatechin içerir.
    c) Diterpenler; İzocommunasit, cis-Communasit ve trans-Communasit
    d) Ayrıca vitaminler, mineraller, reçine, zamk, pektin, organik asitler, Flavonglikozitler, ham şeker ve yağ içerir. en kaliteli Ardıç yağı (Ardıç eter yağı) Bosna’da elde edilir. Türkiye’de yetişen Cüce Ardıç kozalaklarında da %1,41 oranında eterik yağ bulunur ve oldukça kalitelidir.

    Açıklama: Ardıç yağı (Eterik yağı) ile yapılan tedavi denemeleri çok eskiye dayanır. İlk defa 1844’de Berlin’de Ardıç yağı ile tavşanlar üze-rinde Dr. Semon tedavi denemesi yapmıştır. Önce tavşanın midesine 15 gr Ardıç yağı doldurur ve tavşanın yaşadığını görünce 30 gr Ardıç yağı ile deneyine devam eder ve tavşanlar ölür. Ölüm nedenini araştıran doktor yağın böbrekleri tahriş ettiğini iddia eder. Bu ilmi olmayan tamamen yanlış tedavi denemesine dayanarak 1844’den 1993’e kadar ütün uzmanlar Ardıç yağının böbrekleri tahriş edebileceğini bu nedenle en fazla 6 hafta kullanılmasını tavsiye ederler. Prof. Dr. Heinz Schilcher, Berthold.M.Hell ve ekipleri 1993’de Berlin Üniversitesi’nde Ardıç yağı ve Ardıç kozalağı ile yaptıkları geniş çaplı araştırma ve tedavi denemelerinde hiçbir yan tesir tespit edememişlerdir. Bunun üzerine geriye dönük araştırmada Dr.Semon’un ilmi olmayan çalışmasının bu yanılgıya sebep olduğunu tespit etmişlerdir. Ardıç kozalağı ortalama %1 Eterik yağ içerir. 3 kg Ardıç kozalağından 30 gr Ardıç yağı elde edilir. Ortalama 6 Ardıç kozalağı 1 gr yapar ve bundan 10 mg Eter yağı elde edilir. 30 gr Eter yağı elde etmek için 18.000 Ardıç kozalağı gerekir. Bugün tedavi maksadı ile 10-30 mg Eter yağı veya 6-18 Ardıç kozalağı gerekir. Bir insan günde 300-1000 gr ekmek yiyebilir fakat bu oranı 500.000 gr yani 500 kg.a çıkarmak mümkün müdür? İşte gerçekten ilim adamı olmayan insanların yanlış gözlemleri, insanların 1884’den 1993’e kadar Ardıç kozalağı veya yağı hakkında yanlış düşünmelerine neden olmuştur ve hala aynı yanılgıda ısrar edenler de mevcuttur. (Z.P.4.95.205) Ardıç yağında bazen Ardıç odunu, yaprağı ve dallarının da damıtma sırasında ayıklanmaması nedeni ile kalitesiz yağlar elde edilebilir. (NM.5.95.48, Nhp.5.95.738)

    Araştırmalar: Ardıç yağı ve kozalağı ile fareler, tavşanlar, köpekler ve kemeler (lağım fareleri) üzerinde tedavi denemeleri yapılmıştır;
    1) İ.Janku, M.Hava ve O.Motl 1957 ve 1960’da kemeler üzerinde yaptığı tedavi denemesinde Ardıç yağının idrar söktürücü olduğunu tespit etmişlerdir. (HHB.V.569)
    2) G.Vogel 1957’de kemeler üzerinde yaptığı tedavi denemesinde Ardıç yağının safra arttırıcı olduğunu tespit etmiştir. (HHB.V.569)
    3) A.G.Winter 1957’de kemeler üzerinde yaptığı tedavi denemesinde Ardıç yağının idrar yoları enfeksiyonunu önlediği ve bakterileri yok ettiğini tespit etmiştir. (HHB.V.569)
    4) B.Lasheras, P.Turillas ve E.Cenarruzabeitia 1986’da kemeler üzerinde Ardıç kozalağı ile yaptıkları tedavi denemesinde tansiyonu düşür-düğünü tespit etmişlerdir. (HHB.V.574)
    5) S.K.Swanston-Flatt, C.Day, C.J.Bailey ve P.R.Flatt 1990’da fareler üzerinde Ardıç kozalağı ile yaptıkları tedavi denemesinde kandaki şekeri düşürdüğünü tespit etmişlerdir. (HHB.V.574)
    6) N.Mascola, G.Autore, F.Capasso, A.Menghini ve M.P.Fasulo 1987’de Ardıç kozalağı ile kemeler üzerinde yaptıkları tedavi denemesinde ödemi (vücudun su toplaması) önlediğini tespit etmişlerdir. (HHB.V.574)
    Hayvanlar üzerinde yapılan araştırmalar çok olumlu olup, bunu insanlar üzerinde yapılacak tedavi denemesinin takip etmesi gerekmektedir. Umarız ki bu yönde de araştırmalarda yakında yapılır.

    Tesir şekli: idrar ve ter söktürücü, safrayı artırıcı, tansiyon düşürücü, hazmettirici, antiseptik, metabolizmayı kuvvetlendirici ve kandaki şekeri düşürücü etkinliğe sahiptir.
    Kullanılması:
    a) Araştırmalara göre Ardıç yağı ve kozalağı başta idrar yolları enfeksiyonu, şeker hastalığı, yüksek tansiyon, safra yetersizliği, idrar yetersizliği ve ödem gibi rahatsızlıklara karşı kullanılır.
    b) Komisyon E’nin 05/12/1984 tarih ve 228 nolu Monografi bildirisine göre başta sindirim rahatsızlıklarına karşı kullanılır.
    c) Aroma tedavisinde; Ardıç yağı (Ardıç eter yağı); sara, korku, sinirlilik, bronşit, üşütme hastalıkları, verem, bağırsak enfeksiyonu, gastrit, sindirim rahatsızlıkları, şeker hastalığı, ara doku deri iltihaplanması, mesane hastalıkları, idrar yolları ve böbrek taşları, böbrek iltihaplanması, nikris, romatizma ve eklem rahatsızlıklarına karşı kullanılır.
    d) Homeopati’de; Ardıç tentürü başta hidrops (ara doku ve organlarda kanın sıvı maddesinin toplanması), ödem (vücutta su toplanması), böbrek iltihaplanması, yüksek tansiyon, nikris, kanın kirlenmesi ve metabolizma rahatsızlığına karşı kullanılır.

    Çayı: Ardıç kozalağı iki şekilde hazırlanabilir;
    1) Ardıç kozalağından 10-15 adet veya 1 yemek kaşığı demliğe konur ve üzerine 300-400 ml kaynar su ilave edilir ve 5-10 dk demlenmeye bıraktıktan sonra süzülerek içilir.
    Ardıç kozalağından 10-15 adet veya bir yemek kaşığı bir bardağa konur ve üzerine 300-400 ml soğuk su ilave edilerek 5-10 saat bekle-tildikten sonra süzülerek içilir.

    Çay Harmanları

    Gökçek ödeme çayı (vücudun su toplaması)
    20 g Ardıç kozalağı
    20 g Altın başak otu
    20 g Kırkkilit
    20 g Biberiye yaprağı
    20 g Kayışkıran kökü

    Gökçek böbrek ve mesane çayı;
    25 g Ayı Üzümü yap.
    25 g Ardıç kozalağı
    25 g Altın başak otu
    25 g Atkuyruğu

    Gökçek böbrek mesane çayı (mesane üşütmesi nedeni ile idrar artırıcı);
    30 g Kayışkıran kökü
    20 g Ardıç kozalağı
    30 g Altınbaşak otu
    20 g Ayı Üüzmü yap.

    Gökçek böbrek ve mesane çayı (idrar yollarını yıkayıcı);
    20 g Ardıç kozalağı
    20 g Maydanoz tohumu
    20 g Atkuyruğu otu
    20 g Kayışkıran kökü
    20 g Rezene tohumu
    20 g Altınbaşak otu

    Gökçek böbrek ve mesane çayı (idrar yollarındaki taşlarını yıkayıcı);
    30 g Hindiba otu ve kökü
    30 g Ardıç kozalağı
    30 g Maydanoz tohumu
    30 g Ayı Üzümü yap
    30 g Altınbaşak otu

    Gökçek İdrar yolları çayı:
    20g Maydanoz kökü
    20g Ardıç kozalağı
    20g Kayışkıran kökü
    20g Huş yaprağı
    10g Meyan kökü
    10g Civanperçemi otu

    Gökçek İdrar yolları çayı:
    20g Maydanoz kökü
    20g Ardıç kozalağı
    20g Kayışkıran kökü
    20g Ak huş yaprağı
    10g Meyan kökü
    10g Civanperçemi otu

    Gökçek Romatizma çayı;
    20 g Harpago kökü
    20 g Ardıç kozalağı
    20 g Isırgan otu
    20 g Huş yaprağı
    10 g Kuşburnu meyvesi
    10 g Nane yaprağı

    Gökçek Kanı ve idrar yollarını temizleyici çay;
    20 g Huş yaprağı
    20 g Isırgan otu
    20 g Hindiba otu ve kökü
    20 g Altın başak otu
    20 g Ardıç kozalağı

    Aroma tedavisi: Olgunlaşmış Ardıç kozalakları su buharı ile damıtılarak (destilasyonu) yapılarak eterik yağı elde edilir. Ardıç yağı (eter yağı) genellikle renksiz, fakat nadiren yeşile, sarıya veya esmerimsi renge çalabilir. Bu yağdan günde 3-5 defa 5-6 damla alınabilir. Haricense genellikle kramplı, romatizmalı, ağrılı kaslara ve eklemlere sürülerek ovalanır ve masajı yapılır.

    Homeopati’de: Ardıç kozalaklarından 20 gr iyice ezildikten sonra bir şişeye konur ve üzerine %70’lik 80 ml Etanol (alkol) ilave edilerek iki günde bir çalkalanır. Şişe güneş ışınlarından uzakta muhafaza edilir ve 4-6 hafta sonra süzülerek Homeopati’de <> adı ile anılan tentür elde edilir. Bu tentürden günde 3-5 defa 10-15 damla 4-6 hafta süreyle alınır.

    Ekstresi: Ardıç kozalaklarının alkolle ekstraksiyonu ile elde edilen ekstre aynı tentür gibi kullanılır.

    Hastalığın belirtisi (semptom):
    1) Üşütme nedeni ile böbrek iltihaplanması
    2) Kronik böbrek yatakları iltihaplanması
    3) Vücudun su toplaması (ödem) ve idrarda azalma
    4) İdrarın kokulu menekşe gibi kokması
    5) Böbrek civarında bir ağırlık varmış gibi his
    6) İdrarın azalması ve yoğunlaşması
    7) Böbreklerin kronik iltihaplanması
    1) Bu gibi hallerde Ardıç tentürü gerekir.

    Yan tesirleri: Ardıç kozalağının bilinen bir yan tesiri yoktur. Bu konuyu araştırma bölümünde inceledik.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

  • #2

    ARDIÇ KOZALAĞI


    Ağaç | 0,8-1,5 m | 4-5 Aylar | Ca, Ho, Na | Kozalakları, Eter yağı

    B) Cüce Ardıç, Zwerg Wacholder, Juniperus nana WILLD.
    Dağ Ardıcı
    Karadeniz Ardıcı

    Familyası: Selvigillerden, Zypressengewâchse, Cupressaceae

    Drugları: Cüce Ardıç kozalağı; Juniperi nana fructus
    Cüce Ardıç kozalak yağı; Juniperi nana aetheroleum

    Cüce Ardıç kozalağı ve eter yağı aynı Hakiki Ardıç kozalağı ve eter yağı gibi kullanılır ve hatta daha tesirli olduğu yönünde ileri sürülen iddialar da mevcuttur. Aslında Cüce Ardıcının yukarıdakinden farkı sadece yüksek dağlarda yetişmesi ve 0,8-1,5 m arasındaki küçük boyu ve meyvelerinin 6-10 mm büyüklüğünde olması ile ayrılır. Türkiye'nin yüksek dağ ve tepelerinde genellikle de Kuzey ve Doğu Anadolu bölgesinde çok yaygın olarak bulunur.
    Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

    Yorum yap


    • #3
      Ağaç | 3-5 (14) m | 4-5 Aylar | Ca, Ho, Na | Kozalakları, Eter yağı

      C) Katran Ardıcı Stech-Wacholder Juniperus Oxycedrus L.[/B]
      Toros Ardıcı


      Familyası: Selvigillerden, Zypressengewâchse, Cupressaceae

      Drugları: Katran Ardıç kozalağı; Juniperi Oxycedrus fructus
      Katran Ardıç eter yağı; “ “ aetheroleum
      Katran Ardıç yağı (katranı); Juniperi pix

      Toros Ardıç kozalağının Çayı içilir, eterik yağı çıkarılır ve odunlarından Katran elde edilir.
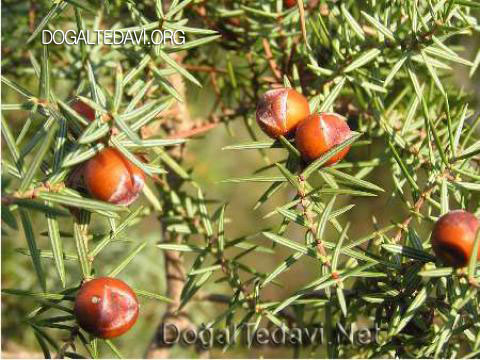
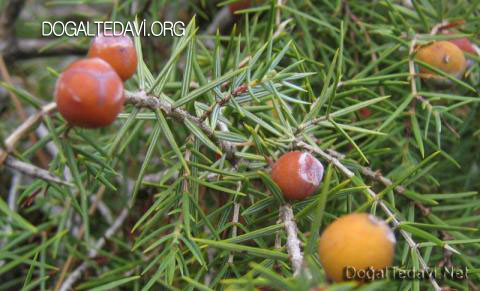
      Vatanı Akdeniz ülkeleri olan bitki Balkanlarda da yetişir ve 3-5 m boyunda nadiren 14 m.yi bulabilir. Yaprakları 4-14 mm uzunluğunda, 1-2 mm genişliğinde ve ucu oldukça sivridir. Kozalakları 6-10 mm çapında önce açık sarı, sonra olgunlaşınca kırmızı veya esmerimsi kırmızı renk-tedir.

      Birleşimi: Kozalaklarında ortalama %1 eterik yağ türevi içerir ve bunların önemlileri; α-Pinen %60, B-Myrcen %25-30, θ-Muurolen %2, Limonen %1 ve çok az miktarda Terpinen-4-ol %0,5 içerir. Katranda (Juniperi pix) δ-Cadinen %25-30, Calamenen %15-16, θ-Muurolen %6 ve az miktarda diğer eterik yağlar içerir. Eskiden Akdeniz ve Ege bölgesinde bulunan Toros Ardıcının dal, odun ve yaprakları güğümlere konur ve altı yakılarak katranı elde edilir. Yapılan araştırmalarda Ardıç katranının mikropları öldürdüğü ve mantarı yok ettiği ispatlanmıştır. Eskiden deri hastalıkları, ekzema, sedef hastalığı, uyuz, saç dökülmesi, kaşıntı ve romatizmaya karşı kullanılmıştır. Dahili olarak günde 3-5 defa 3-4 damla alınabilir. Avrupa'da sabun, şampuan ve kozmetik maddelere katkı maddesi olarak katılmaktadır. Türkiye'de Hakiki Ardıç kozalağı yerine genellikle Toros Ardıç kozalağı kullanılmaktadır. Oysa Karadeniz bölgesinde yaygın olarak yetişen Cüce Ardıcın kozalakları daha etkilidir.
      Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

      Yorum yap


      • #4
        Juniperus communis L.'nin Su Özü, Hücre Ölümünü İndükler ve p53 ve PI3K/Akt Yolları aracılığıyla Kanser Hücrelerini Sitostatik İlaçlara Duyarlılaştırır

        Atso Raasmaja , 1, * Ulla Stenius , 2 ve Aram Ghalali 2 Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .

        Soyut
        Ardıç ( Juniperus communisL.), genellikle yiyecek ve içeceklerde baharat olarak ve beslenme amaçlı kullanılan kuzey iğne yapraklı bir bitkidir. Ardıç özütünün (JE) insan nöroblastom hücrelerinde p53 aktivitesini, hücresel stresi ve gen ekspresyonunun neden olduğu hücre ölümünü etkilediği daha önce bildirilmişti. Bu nedenle ardıçın p53 ve Akt sinyali üzerindeki etkileri, Western blot, konfokal mikroskopi ve MTT analizi kullanılarak A549 akciğer, 22RV1 ve DU145 prostat ve HepG2 karaciğer kanseri hücrelerinde daha ayrıntılı olarak incelenmiştir. Ardıcın aynı anda hücre canlılığını azalttığını, p53 yolunu aktive ettiğini ve PI3K/Akt yolunu etkisiz hale getirdiğini bulduk. p53 aktivasyonu, artan nükleer p53 seviyesi ile ilişkilendirildi. Akt defosforile edildi ve inaktivasyonu, artan PHLPP1 ve PHLPP2 fosfataz seviyeleri ile ilişkilendirildi. PARP'ın paralel artışları, JE'nin hücre ölümünü aktive ederek hücre canlılığını azalttığını göstermektedir. Ek olarak, JE gemsitabin ve 5-florourasil antikanser ilaçlarının etkilerini güçlendirdi. Böylece JE, p53 ve Akt yolakları yoluyla farklı kanser hücre dizilerinde hücre ölümünü aktive edebilir.
        Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

        Yorum yap


        • #5
          Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

          Yorum yap


          • #6
            Bitkisel Tedavi - İbrahim Gökçek Ürünleri Resmi Satış Sitesidir.

            Yorum yap


            • #7
              Epub 2019 17 Temmuz. Juniperus communis, Tümör Büyümesini Engelleyerek ve Apoptozu İndükleyerek Melanom Tümör Oluşumunu Bastırıyor

              Hong-Wei Gao1, Xiao-Fan Huang2 3, Tzi-Peng Yang3 4, Kai Fu Chang2 3, Ling-Wen Yeh3, Ming-Chang Hsieh3 4, Jun-Cheng Weng5, Nu-Man Tsai3 4
              Bağlantılar genişletmekSoyut

              Metastatik kapasitesi ve ölüm oranı yüksek olan melanom, Batı ülkelerinde sık görülen bir deri kanseridir. Bu çalışmanın amacı, Juniperus communis (JCo) ekstraktının melanomun baskılanmasında etkili olup olmadığını ele almak ve in vitro ve in vivo olarak dahil olan antikanser mekanizmalarını aydınlatmaktı.. JCo ekstraktının tümör baskılama ve toksisite üzerindeki antitümör kapasiteleri değerlendirildi ve sonuçlar, hücre döngüsünün aracılık edilmesi, otokrin sinyallemesinin azaltılması ve apoptozun indüklenmesi yoluyla tümör yükünün azaldığını gösterdi. Ayrıca, JCo özütü, yalnızca düşük patolojik ve fizyolojik toksisite ile test deneklerinin hayatta kalma oranını önemli ölçüde uzatmıştır. Ek olarak, JCo özütü, tümör eliminasyonu sürecinde kanser kök hücre ile ilişkili anjiyojenik ve metastatik proteinleri de azalttı. Bu sonuçlara dayanarak, bu çalışma, JCo özütünün tümör büyümesini baskıladığını ve apoptozu indüklediğini ve JCo özütünün melanom tümörijenezinin önlenmesi için yararlı olabileceğini düşündürmektedir.

              Yorum yap


              • #8
                Üç Juniperus türünün uçucu yağlarının in vitro antimikrobiyal ve antiinflamatuar aktivitelerine dayalı olarak etkinliğe yönelik ayrımı

                Yazar bağlantıları bindirme panelini açarReham S. Darwish birHala M. Hammoda birDoaa A. Ghareeb b cAli SA Abdelhamid cEl Moataz Bellah El Naggar dFathallah M. Harraz birEman Shawky bir
                Daha fazla göster
                Mendeley'e ekle
                Paylaş
                Anmak
                https://doi.org/10.1016/j.jep.2020.112971Hakları ve içeriği alın Soyut

                etnofarmakolojik alaka düzeyi

                Ardıç bitkileri, halk hekimliğinde antiseptik olarak ve romatoid artrit gibi inflamatuar bozuklukların tedavisinde yaygın olarak kullanılan sedir ağacı yağının önemli kaynakları olarak kabul edilir, ancak iddia edilen kullanımları destekleyecek yeterli bilimsel kanıt yoktur ve herhangi bir spesifikasyonu yoktur. en aktif olarak belirli Juniperus türleri. Çalışmanın amacı

                Bu çalışmanın amacı, üç Juniperus türünün uçucu madde profilinin çıkarılmasıdır ; J. communis , J. yatayis ve J. chinensis'e ek olarak, incelenen üç uçucu yağın antimikrobiyal ve anti-inflamatuar aktivitelerine dayalı olarak LPS (lipopolisakkarit) ile uyarılan WBC'lerde (Beyaz kan hücreleri) etkinliğe yönelik ayrımcılığına ek olarak, Her bir yağın biyolojik aktiviteleri üzerindeki spesifik değişkenlik etkisi. Malzemeler ve yöntemler

                Çalışılan üç bitkinin uçucu yağlarının uçucu bileşenlerinin profillenmesi, GC-FID (Gaz kromatografisi – alev iyonizasyon dedektörü) ve GC–MS (Gaz kromatografisi - kütle spektrometrisi) kullanılarak elde edildi. İncelenen uçucu yağların antimikrobiyal aktiviteleri araştırılmış ve yağlar için minimum inhibitör konsantrasyonu (MIC) belirlenmiştir. Pro-inflamatuar sitokinlerin üretimi, ELISA (Enzim bağlantılı immünosorbent tahlili) ile değerlendirildi. Her aktiviteden sorumlu biyobelirteçlerin tanımlanması, çok değişkenli istatistiksel analiz kullanılarak gizli yapılar modeline ortogonal projeksiyonun oluşturulması yoluyla denendi. Sonuçlar

                İncelenen üç bitkinin uçucu yağlarında kırk beş bileşen tanımlanmıştır. J. horizontalis yağı, E. coli'ye karşı en yüksek aktiviteyi gösterirken, J. communis , S. aureus'a karşı en yüksek aktiviteyi göstermiştir . OPLS model biplotu , J. communis ve J. horizontalis'ten alınan J. chinensis petrol örneğinin sınıflar arası ayrımını gösterdi . Üç yağlar, pro-enflamatuar sitokinler, tümör nekroz faktörü (TNF) üretimini azaltmak anlamlı bulunmuştur - a (IL) -1, interlökin p ve y, interferon (INF- γ)lipopolisakkarit ile aktive olan beyaz kan hücrelerinde. Tüm çalışılan yağlar TNF-a azaltılması benzerdi α ve INF y ise, J. chinensis yağı, IL-1'e karşı yüksek bir potans p . TNF- α ve INF- γ proinflamatuar mediatörlerin katsayı grafikleri, 1-terpineol, 4-terpineol, bornyl asetat, dl-limonen ve α- pinene'nin her iki aktiviteye de pozitif katkı sağladığını gösterirken, β- thujone, 3-carene ve γ -muurolen, IL-1 β inhibitör aktivitesine pozitif katkı sağlayanlardı . Çözüm

                İncelenen üç yağ arasında uçucu profillerinde gözlemlenen farklılıklar, spesifikler arası değişkenliğin test edilen yağların biyolojik aktiviteleri üzerindeki etkisini göstermektedir. Test edilen yağların, E.coli ve S. aureus'a karşı iyi antibakteriyel aktivitelere sahip olduğu , halk arasında topikal bir antiseptik olarak kullanımını haklı çıkarırken, insan WBC'lerinde gözlemlenen anti-inflamatuar etkilerin en azından kısmen, bunların üzerindeki inhibitör etkisine bağlı olduğu gösterilmiştir. proinflamatuar sitokinlerin üretimi. grafik soyut

                1. İndir : Yüksek çözünürlüklü görüntüyü indirin (297KB)
                2. İndir : Tam boyutlu resmi indir
                Tanıtım

                Juniperus cinsi , iğne yapraklı Cupressaceae familyasına ait cinslerden biridir. Avrupa, Asya ve Kuzey Amerika dahil olmak üzere kuzey yarımkürenin ılıman bölgelerinde dağılırlar (Seca ve Silva, 2005; Tumen ve diğerleri, 2012). Juniperus cinsi yaklaşık 68 tür içerir. En yaygın olarak bilinen türler arasında J. communis , J. indica, J. recurva, J. horizontalis, J. chinensis ve J. squamata bulunur.

                Ardıç bitkileri, halk hekimliğinde yara iyileşmesi, antiseptik, rubefacient olarak ve anksiyete, sinirsel gerginlik ve strese bağlı durumlara karşı aromaterapide yaygın olarak kullanılan sedir ağacı yağının önemli kaynakları olarak kabul edilir (Cioanca ve ark., 2015). Yağ, cilt sağlığı bakımı ve romatoid artrit ve gut gibi inflamatuar bozuklukların tedavisi için kullanılır (Han ve Parker, 2017). Ardıç anti-inflamatuar potansiyeli deneysel olarak kurulmuş ve farklı ülkelerin halk tıbbında iletilmiştir. Ardıç bitkileri, anti-inflamatuar ve analjezik özellikleri nedeniyle Tunus, Mısır ve Arap yarımadası dahil olmak üzere birçok Arap ülkesinde birçok geleneksel şifacı tarafından reçete edilmektedir. İlgili Juniperus communis; çilek idrar söktürücü, emmenagog, sindirim ve iltihap önleyici olarak idrar antiseptiği olarak kullanılır. Havadan parçalar, akut ve kronik sistit, albüminüri, mesane nezlesi, böbrek baskılanması, beyaz akıntı ve amenore için kullanılır. Ayrıca ağaç kabuğu astım, bel soğukluğu, artrit, solunum yolu rahatsızlıkları, diyabet, mesane rahatsızlıkları, kronik piyelonefrit, öksürük, karın rahatsızlıkları ve cilt rahatsızlıklarının tedavisinde kullanılır (Bais ve diğerleri, 2014). Öte yandan, J. horizontalis'in dallarının veya etli konilerinin infüzyonu öksürük, soğuk algınlığı ve ateş tedavisinde kullanılır. Koniler veya dallar buhar banyosu olarak da kullanılabilir (Moerman, 1998; Thomas, 1990). İle ilgili olarak , J. chinesis; sapları paraziter cilt problemleri ve romatizma tedavisinde kullanılır. Meyve konvülsiyonlar, aşırı terleme ve hepatit tedavisinde kullanılır. Kök yanık ve haşlanma tedavisinde kullanılmaktadır (Duke ve Ayensu, 1985). Ayrıca, kurutulmuş öz odun soğuk algınlığı, idrar yolu enfeksiyonu, ürtiker, dizanteri, kanama, lökor ve romatizmal artrit tedavisinde geleneksel bir ilaç olarak kullanılmıştır (Lim ve ark., 2002).

                Juniperus uçucu yağlarının ana bileşenlerinin α- pinene, β- pinene, sabinene, myrcene, dl-limonen ve bornyl asetat olduğu bilinmektedir (Ehsani ve diğerleri, 2012; Tumen ve diğerleri, 2012). Farklı Juniperus türlerinin uçucu yağlarının çoğu benzerliklere sahip olsa da, son çalışmalar kimyasal bileşen benzerliklerinin esasen eşdeğer biyolojik etkinlik sağlamadığını göstermiştir. Bu nedenle, farklı türlerin yağlarını sadece kimyasal bileşenlerine göre değil, daha da önemlisi, etkinlikle ilişkili işaretler olarak bilinen hedeflenen aktiviteden sorumlu olan kimyasal işaretlere göre ayırmaya çalışmak son derece önemlidir (Shawky ve diğerleri, 2018). .

                Bu arada inflamatuar süreç sırasında vasküler geçirgenlikte, lökosit birikiminde değişiklikler olduğu, ayrıca inflamatuar mediatörlerin salınımının meydana geldiği bildirilmektedir (Chen ve ark., 2018; Mendes ve ark., 2018). Fiziksel, biyokimyasal ve biyolojik uyarılar, makrofajlar gibi inflamatuar lökositlerin aktivasyonu ile sonuçlanır ve immün yanıt olarak proinflamatuar proteinlerin, sitokinlerin ve enzimlerin indüksiyonuna ve sentezine yol açar. Sitokinler, konakçının enfeksiyona, bağışıklık tepkilerine, iltihaplanmaya ve travmaya tepkilerini düzenler. Bazı sitokinler hastalığı daha kötü hale getirir (iltihaplanma öncesi), bazıları ise iltihabı azaltır ve iyileşmeyi destekler (iltihap önleyici). İnterlökin (IL)-1 ve tümör nekroz faktörü (TNF- α ) gibi zararlı proinflamatuar sitokinleri bloke etmeye odaklanan anti-inflamatuar aktivite). Bu proinflamatuar belirteçlerin kronik ve kontrolsüz aktivasyonu, bazı inflamatuar hastalıkların gelişmesine neden olur. Bu nedenle, sentetik ilaçların yan etkilerinin üstesinden gelmek için bu enzimleri hedeflemek ve inflamatuar sinyal iletim yollarını bozmak için doğal kaynaklı ilaçları keşfetmeye acil bir ihtiyaç vardır (Atanasov ve ark., 2015).

                Bu çalışmanın amacı, Juniperus türlerinin üç uçucu yağının uçucularının profilini çıkarmaktı ; GC-FID-MS ile J. communis , J. horizontalis ve J. chinensis , kemometriyle birleştirilmiş analizler, ayrıca incelenen üç uçucu yağın antimikrobiyallerine dayalı olarak etkinliğe yönelik ayrımcılığına ve inter- uçucu yağların kimyasal bileşenleri üzerindeki spesifik değişkenlik etkisi ve bunun her bir yağın biyolojik aktiviteleri üzerindeki müteakip etkisi.Bölüm snippet'leri

                Bitki materyali

                J. communis , J. horizontalis ve J. chinensis'in havadan parçaları (yaprakları ve dalları) , Mısır, Kahire'deki Uluslararası Bahçe'den üç yıl üst üste (2017, 2018 ve 2019) Aralık'ta (kış sezonu) toplandı. Her bitki 3 yıl boyunca her yıl üç kez toplanmıştır; her seferinde her bitkiden 500 g toplandı (her bitkiden 1500 g/yıl). Bitkilerin kimliği, Mısır, Kahire, El Orman Bahçesi'ndeki bitki tanımlama uzmanı Dr. Therese Labib tarafından doğrulandı. ÜçGC/MS analizi kullanılarak incelenen üç yağın uçucu bileşen profillerindeki değişkenlik

                J. communis , J. yatayis ve J. chinensis'in uçucu bileşenlerinin spesifik değişkenliğini incelemek için , incelenen üç bitkinin (hava kısımları) uçucu yağları Aralık 2017, 2018 ve 2019'da toplandı ve tarafından analiz edildi. Sırasıyla yağ bileşenlerinin tanımlanması ve miktarının belirlenmesi için GC-MS ve GC-FID.

                Tablo 1'in kapsamlı çalışması, incelenen üç bitkinin uçucu yağlarında kırk beş bileşenin tanımlandığını göstermiştir. Yağ verimi ile ilgili olarak, J.Çözüm

                Üç Juniperus türünden ekstrakte edilen üç uçucu yağın uçucularının, kemometriyle birleştirilmiş GC-MS analizi kullanılarak profillenmesi, spesifikler arası değişkenlikten kaynaklanan test edilen yağlar arasında uçucu profillerinde bir varyasyon olduğunu göstererek etkili bir şekilde gerçekleştirildi. Her bir yağın etkililiğe dayalı ayrımı, yağları biyolojik özelliklerine göre ayırt etmek için antimikrobiyal ve antiinflamatuar aktivitelerin ardından OPLS modellemesi değerlendirilerek yapıldı.Referanslar (50)

                Yorum yap


                • #9
                  Juniperus communis L.'nin Su Özü, Hücre Ölümünü İndükler ve p53 ve PI3K/Akt Yolları aracılığıyla Kanser Hücrelerini Sitostatik İlaçlara Duyarlılaştırır

                  Atso Raasmaja , 1, * Ulla Stenius , 2 ve Aram Ghalali 2
                  Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                  Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
                  Git: Soyut


                  Ardıç ( Juniperus communisL.), genellikle yiyecek ve içeceklerde baharat olarak ve beslenme amaçlı kullanılan kuzey iğne yapraklı bir bitkidir. Ardıç özütünün (JE) insan nöroblastom hücrelerinde p53 aktivitesini, hücresel stresi ve gen ekspresyonunun neden olduğu hücre ölümünü etkilediği daha önce bildirilmişti. Bu nedenle ardıçın p53 ve Akt sinyali üzerindeki etkileri, Western blot, konfokal mikroskopi ve MTT analizi kullanılarak A549 akciğer, 22RV1 ve DU145 prostat ve HepG2 karaciğer kanseri hücrelerinde daha ayrıntılı olarak incelenmiştir. Ardıcın aynı anda hücre canlılığını azalttığını, p53 yolunu aktive ettiğini ve PI3K/Akt yolunu etkisiz hale getirdiğini bulduk. p53 aktivasyonu, artan nükleer p53 seviyesi ile ilişkilendirildi. Akt defosforile edildi ve inaktivasyonu, artan PHLPP1 ve PHLPP2 fosfataz seviyeleri ile ilişkilendirildi. PARP'ın paralel artışları, JE'nin hücre ölümünü aktive ederek hücre canlılığını azalttığını göstermektedir. Ek olarak, JE gemsitabin ve 5-florourasil antikanser ilaçlarının etkilerini güçlendirdi. Böylece JE, p53 ve Akt yolakları yoluyla farklı kanser hücre dizilerinde hücre ölümünü aktive edebilir.

                  Anahtar Kelimeler: hücre ölümü, bitki özü, Juniperus communis L., p53, Akt, A549 küçük olmayan akciğer kanseri hücreleri
                  Git: 1. Giriş


                  Bitki kaynaklı fitokimyasallar, potansiyel beslenme ve sağlığı geliştirme stratejileri için bileşikler olarak geniş çapta çalışılmıştır. Ardıç ( Juniperus communis L., Cupressaceae) kuzey iğne yapraklı bir bitkidir ve meyveleri baharat olarak ve başka amaçlarla kullanılmıştır. Ardıç özütü (JE) birçok fenolik bileşik içerdiğinden, potansiyel fizyolojik etkilerine, spesifik biyoaktif özellikleri aracılık edebilir. Önceki çalışmalarda, JE'nin p53 aktivitesi, hücresel stres ve gen ekspresyonu gibi çeşitli hücresel fonksiyonları etkilediği ve ayrıca insan nöroblastom hücrelerinde hücre ölümünü indüklediği bulunmuştur [ 1 , 2 , 3 ].

                  p53 ve PI3K/Akt sinyal yolakları, hücre sağkalımı ve apoptozun iki anahtar düzenleyicisidir ve bunların bozulmuş işlevleri birçok kanser türüyle bağlantılıdır [ 4 ]. Tümör baskılayıcı protein p53, sitozol ve çekirdekte aktiftir ve birçok hücresel proteinin yanı sıra gen ekspresyonunu kontrol eder [ 5 , 6 ]. p53, doğrudan sitozolik etkiler ve nükleer translokasyon yoluyla protein fosforilasyonu/defosforilasyonu ve gen asetilasyonu/deasetilasyonuna etki eder. Akt'nin aktivitesi, plazma zarına bağlı ikinci haberci sisteminin bir parçası olarak fosfatidilinositol-3-kinaz (PI3K) tarafından düzenlenir [ 7 , 8]. PI3K tarafından fosfatidilinositol 3,4,5-trifosfat (PIP3) üretimi Akt fosforilasyonuna yol açar. Akt, fosforile edilmiş formunda aktiftir ve daha sonra çekirdeğe yer değiştirebilir ve gen ekspresyonunu kontrol edebilir. Akt fosforilasyonunun kendisi PHLPP1 ve PHLPP2 fosfatazlar tarafından düzenlenir ve bunların bozulmuş işlevi kanserle bağlantılıdır [ 9 , 10 ].

                  Amacımız, A549 akciğer kanseri, 22RV1 ve DU145 prostat kanseri ve HepG2 karaciğer kanseri hücrelerinde hücre ölümünün düzenlenmesi üzerindeki ardıç meyvesi ekstresinin moleküler etkilerini incelemekti. JE'nin etkileri, hücre canlılığı, p53, pAkt, PHLPP1/2, pGsk3Ser9 ve PARP bölünmesi seviyeleri üzerinde spesifik olarak analiz edildi. Ek olarak, JE'nin etkileri, iki antikanser ilacı, gemsitabin ve 5-florourasil ile kombinasyon halinde incelenmiştir.

                  Git: 2. Sonuçlar

                  2.1. Ardıç Özü Birkaç Kanser Hücre Çizgisinde Azalmış Hücre Canlılığı
                  JE'nin hücre canlılığı üzerindeki etkileri, A549 küçük olmayan akciğer kanseri, 22RV1 ve DU145 prostat kanseri ve HepG2 hepatoselüler karsinom hücre dizilerinde analiz edildi. JE'nin tüm bu kanser hücre dizilerinde benzer hassasiyetle hücre canlılığında doza bağlı bir azalmaya neden olduğunu bulduk (Şekil 1A ve Şekil 3A–C). Azalan hücre canlılığının nedenlerini anlamak için, JE'nin bu etkilerine hücre ölümüyle ilgili mekanizmaların aktivasyonu ve aracılık edip etmediğini araştırdık (örn., p53 ve pAkt yolları).
                  Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ijms-20-02054-g001.jpg
                  Şekil 1
                  Ardıç özü (JE), hücre canlılığını azalttı ve küçük olmayan akciğer kanseri A549 hücrelerinde P53 ve apoptozun aktivasyonunu indükledi. Hücreler, Malzemeler ve Yöntemler bölümünde tarif edildiği gibi büyütüldü, daha sonra 24 saat aç bırakıldı ve 24 saat boyunca JE ile inkübe edildi. ( A ) Hücre proliferasyonu, MTT tahlili ile tahmin edildi. ( B ) Hücre lizatları, Western blot ile bölünmemiş PARP (116 kDa) ve bölünmüş PARP (85 kDa) için analiz edildi. Yükleme kontrolü olarak Cdk2 kullanıldı. ( C ) Hücreler sabitlendi ve P53 için boyandı ve konfokal mikroskopi ile analiz edildi (büyütme: 63x). Sinyaller nicelendirildi ve kontrol yüzdesi olarak sunuldu. ( D ) Hücre lizatları, Western blot ile P53 için analiz edildi. Şekil B ve Dyeniden aynı deneylerden elde edilir ve Cdk2 yükleme kontrolü ( B )' de gösterilir . Veriler, çubuklar ± üç bağımsız deneyden standart sapma olarak sunulmuştur. * Kontrolden önemli ölçüde farklı, p ≤ 0.05. 2.2. Ardıç Özü, Hücre Çoğalmasının İnhibisyonuna Paralel Olarak p53 Yolunu Aktive Etti


                  p53 proteinindeki ve PARP bölünmesindeki değişiklikler genellikle apoptozu saptamak için kullanılır ve p53'ün nükleer lokalizasyonunun proapoptotik özellikleri için çok önemli olduğu düşünülür [ 11 ]. Burada, A549 hücreleri JE ile tedavi edildiğinde bölünmüş PARP seviyesinde doza bağlı bir artış ve bölünmemiş PARP'de bir azalma tespit edildi (Şekil 1B). Daha sonra, JE'nin küçük olmayan akciğer kanseri A549 hücrelerinde p53 seviyeleri ve nükleer translokasyon üzerindeki etkilerini de inceledik. JE'nin p53 seviyesini arttırdığını bulduk (Şekil 1D) ve p53'ün nükleer translokasyonunu indükledi (Şekil 1C). P53 ve PARP üzerindeki etkiler, hücre sayısında azalmaya paralel olarak meydana geldi ve hücre ölümünde aktif bir rol oynadı. 2.3. Ardıç Özü Akt Yolunu Devre Dışı Bıraktı


                  Akt'nin hücreleri apoptoza karşı koruduğu ve kanser tedavisini engellediği bilinmektedir. JE'nin, Akt'nin aktive edilmiş bir formu olan pAkt seviyesi üzerindeki etkisi, A549 hücrelerinde incelenmiştir. JE'nin hem Serin 473 (Ser473) hem de Treonin 308 (Thr308) kalıntılarında Akt fosforilasyonunu doza bağlı bir şekilde azalttığını bulduk (şekil 2A). Akt aşağı akış hedefi pGsk3β'nın fosforilasyonu inhibe edildi, bu da JE'nin Akt sinyalini azalttığını doğruladı (şekil 2A). Ayrıca, JE, fosfatazlarını, PHLPP1 ve PHLPP2'yi hedefleyerek Akt'yi düzenler gibi görünmektedir. JE, her iki fosfatazın seviyelerini, pAkt seviyelerindeki düşüşlerle ilişkili olacak şekilde arttırdı (şekil 2B). Tüm bu sonuçlar, Akt yolunun azalmış aktivitesi ile uyumludur ve JE ile indüklenen hücre ölümünde Akt'nin önemli bir rolüne işaret eden artan hücre ölümü seviyesine karşılık gelir.
                  Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ijms-20-02054-g002.jpg
                  Ayrı bir pencerede aç
                  şekil 2
                  JE, A549 hücrelerinde Akt sinyal yolunu inhibe etti. Serum açlığı çeken A549 hücreleri, 24 saat boyunca JE ile işlendi. ( A ) Hücre lizatları, Western blot ile pAkt Ser473, pGSK3P Ser9 ve pAkt Thr308 için analiz edildi. ( B ) Hücre lizatları, Western blot ile PHLPP1 ve PHLPP2 için analiz edildi. ( A , B ) Yükleme kontrolü olarak Cdk2 kullanıldı. Veriler, çubuklar ± üç bağımsız deneyden standart sapma olarak sunulmuştur. * Kontrolden önemli ölçüde farklı, p ≤ 0.05. 2.4.

                  Ardıç Ekstraktının Prostat ve Hepatoselüler Karsinom Hücreleri Üzerindeki Etkileri

                  JE'nin etkileri, ardıç kaynaklı mekanizmaların genelliğini ve hücre ölümünün aktivasyonunu araştırmak için prostat ve hepatoselüler kanser hücrelerinde daha fazla incelenmiştir. Ardıç tedavisinin 22RV1 ve DU145 prostat kanseri ve HepG2 hepatoselüler karsinom hücrelerinde de p53 seviyesini arttırdığı gösterildi (Figür 3D–F). Anti-proliferatif etkiler doğrultusunda (Figür 3A–C), JE, 22RV1 ve DU145 prostat kanseri hücrelerinde ve HepG2 hepatoselüler karsinom hücrelerinde hem pAkt hem de pGsk3β düzeylerini düşürdü (Figür 3D–F).
                  Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ijms-20-02054-g003.jpg
                  Ayrı bir pencerede aç
                  Figür 3
                  JE, prostat ve karaciğer kanseri hücrelerinde hem pAkt seviyelerini hem de hücre proliferasyonunu azalttı. Serum açlığı çeken 22RV1, DU145 ve HepG2 hücreleri, 24 saat boyunca JE ile işlendi. ( A – C ) Hücre proliferasyonu MTT tahlili ile tahmin edildi. ( D – F ) Hücre lizatları, Western blot ile pAkt Ser473, pGsk3β Ser9 ve P53 için analiz edildi. Yükleme kontrolü olarak Cdk2 kullanıldı. Veriler, çubuklar ± üç bağımsız deneyden standart sapma olarak sunulmuştur. * Kontrolden önemli ölçüde farklı, p ≤ 0.05.

                  2.5. Ardıç Özü A549 Küçük Akciğer Kanseri Hücrelerini 5-Florourasil ve Gemsitabine Karşı Duyarlılaştırdı
                  JE aracılı mekanizmaların diğer hücre ölüm yollarıyla etkileşimi, akciğer ve pankreas kanserlerinde antikanser ilaçları olarak kullanılan 5-florourasil ve gemsitabin kullanılarak incelenmiştir. JE'nin bu bileşiklerin etkinliğini artırıp artırmadığını belirlemek için, JE'nin hücre canlılığı ve A549 hücrelerinde 5-florourasil ve gemsitabin tarafından indüklenen pAkt aktivasyonu üzerindeki etkilerini araştırdık. Tek başına 5-florourasil ve gemsitabin ile hücre canlılığındaki azalmalar, pAkt ve onun aşağı akış hedefi pGsk3β'deki azalma ile ilişkilendirildi (Şekil 4A, B). Hücreler, JE ve antikanser ilaçların bir kombinasyonu ile tedavi edildiğinde, hem pAkt hem de pGsk3β'deki azalmalar önemli ölçüde güçlendi, bu da pAkt yolunda 5-florourasil/gemsitabin ve ardıç arasında bir etkileşim olduğunu düşündürdü.
                  Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı ijms-20-02054-g004.jpg
                  Ayrı bir pencerede aç
                  Şekil 4
                  JE, A549 hücrelerinde pAkt'ı azalttı ve gemsitabin ve 5-florourasil'in etkisini artırdı. Serum açlığı çeken A549 hücreleri, 24 saat boyunca JE ve/veya gemsitabin veya 5-florourasil ile tedavi edildi. ( A ) Hücre proliferasyonu MTT tahlili ile tahmin edildi. ( B ) Hücre lizatları, Western blot ile pAkt Ser473 ve pGSK3p Ser9 için analiz edildi. Yükleme kontrolü olarak Cdk2 kullanıldı. Veriler, çubuklar ± üç bağımsız deneyden standart sapma olarak sunulmuştur. *Kontrolden önemli ölçüde farklı, p ≤ 0.05.

                  Git: 3. Tartışma
                  Verilerimiz, düşük konsantrasyonlarda JE'nin birkaç kanser hücre hattında Akt'nin fosforilasyonunu inhibe ettiğini göstermektedir. Ardıçın hücreleri sitostatik ilaçlara karşı duyarlı hale getirdiğini gösteren sonuçları da sunuyoruz. Son raporlar, farklı ilaçların ve doğal ürünlerin birlikte kullanımının kanser tedavisinin etkinliğini artıracağını öne sürdü. Örneğin, statinler ve etoposid, doksorubisin veya 5-florourasil kombinasyonu ile tümörijenik hücrelerde apoptozun güçlenmesi bulundu [ 12 , 13 ]. Ayrıca, statin tedavisi, A549 küçük olmayan akciğer kanseri hücrelerinde etoposid ve 5-florourasil duyarlılığını arttırdı [ 14]. Statin kaynaklı apoptoz duyarlılığına, Akt fosforilasyonunun inhibisyonu ve nükleer translokasyonun aracılık ettiği öne sürülmüştür. Benzer şekilde, doğal bileşiklerin ve ekstraktların kullanımı ile artmış apoptoz bulunmuştur. Örneğin, kanser hücrelerinde şarap ve biberiye tedavilerinin antitümör etkilerine çeşitli bileşiklerin birleşik etkisi aracılık edebilir [ 15 , 16 ]. Daha önceki çalışmalar, ardıç özü [edilen insan SH-SY5Y nöroblastom hücrelerinde, p53 miktarı ve nükleer translokasyonunu arttırarak hücre ölümünü aktive edilen, özellikle de göstermiştir 3]. Bu çalışmada, JE'nin antikanser etkileri, p53 aktivasyonu ve pAkt inaktivasyonu ile paralel olarak görülmüştür; bu, özün, bu yolların her ikisini de düzenleyerek ve muhtemelen başka yollarla hücre ölümünü desteklediğini düşündürmektedir.

                  JE'nin bir bileşim analizi, flavonlar, flavonoller, fenolik asitler, flavanoller ve biflavonoidler [ 1 , 2 , 3 , 17 ] olmak üzere beş ana gruba ayrılan birkaç fenolik bileşiği tanımladı . En bol bulunan fenolik bileşikler rutin, apigenin, isoscutellarein, hypolaetin, protocatechuic asit ve rutin idi. Burada, etkili konsantrasyonlar, doz bağımlılığı, maruz kalma süreleri ve mekanizmalar, incelenen tüm kanser hücre dizilerinde benzerdi ve nöroblastom hücrelerinde daha önceki bulgularımız ile karşılaştırılabilirdi. Buna göre, fenolik bileşiklerin benzersiz bir kombinasyonundan oluşan JE'nin spesifik apoptotik mekanizmalarla kanser hücrelerini hedef aldığı varsayılmıştır.

                  Mevcut sonuçlar, JE'nin hücre ölümünü aktive etme yeteneğinin, burada çeşitli kanser hücre tiplerinde görüldüğü gibi daha genel bir etki olduğunu kanıtladı. Daha önceki çalışmalarda, JE yalnızca artan p53 aktivitesi ve hücre ölümü gösteren insan SH-SY5Y nöroblastom hücrelerinde incelendi [ 1 , 3 ]. Bu çalışmada, JE'nin antikanser etkileri, A549 küçük olmayan akciğer kanseri A549, 22RV1 ve DU145 prostat kanseri ve HepG2 hepatoselüler karsinom hücrelerinde de bulundu. İlginç bir şekilde, JE'nin etkileri, tek başına ilgili bileşikler için kullanılanlardan 100-1000x daha düşük konsantrasyonlarda bile oldukça küçük miktarlarda gözlemlendi. Tanımlanan fenolik bileşikler, JE işlemlerinde nanomolar konsantrasyonlarda mevcuttu [ 3]. Genel olarak, tek başına kullanıldığında, saf fenolik bileşikler, hücre canlılığını azaltmada veya mikromolar konsantrasyonlarda hücre ölümünü aktive etmede etkili olmuştur. Bu, örneğin SH-SY5Y nöroblastom hücrelerinde [ 1 , 18 , 19 ] apigenin ve kurkumin için veya A549 küçük akciğer kanseri hücrelerinde [ 20 , 21 ] naringenin ve kersetin için gösterilmiştir . Bu nedenle, JE'nin etkilerinin, ortak veya farklı mekanizmalar yoluyla birkaç bitki polifenolleri arasındaki güçlenme, sinerji veya her ikisinden kaynaklandığını öneriyoruz.

                  PI3K/Akt sinyal yolu, insan kanserlerinde sıklıkla yukarı regüle edilir ve sitostatik ilaçlar tarafından indüklenir. Sonuçlarımız, JE'nin fosforilasyonunu inhibe ederek PI3K/Akt yolunu inhibe ettiğini göstermektedir. Treonin 308 ve Serin 473 defosforile edildi ve Akt yolunun tam aktivasyonu Treonin 308'deki Akt fosforilasyonuna bağlı olduğundan ve Serin 473'teki fosforilasyon treonin kaynaklı aktivasyonun korunmasına yardımcı olduğundan, Akt yolunun inaktivasyonu ile sonuçlandı. Bu inhibisyona, PHLPP1 ve PHLPP2 fosfataz seviyelerindeki JE kaynaklı artışlar aracılık edebilir. Bu fosfatazlar, Akt defosforilasyonundan sorumludur [ 10]. Hem PHLPP1 hem de PHLPP2, tümör baskılayıcılardır ve birçok kanserde aşağı regüle edilir, böylece Akt aktivitesini korur ve ayrıca çoğalmayı, büyümeyi ve hayatta kalmayı destekler. Ek olarak, JE, Akt'nin aşağı akış hedefi olan pGSK3β'nın fosforilasyonunu ve aktivasyonunu azalttı.

                  Hücre ölümünün bir diğer önemli düzenleyicisi de p53 tümör baskılayıcıdır. p53, tümörlerin çoğunda mutasyona uğramış veya etkisiz hale getirilmiştir. Bu çalışmada, p53'ün nükleer translokasyonu ve bölünmüş/sağlam PARP oranı paralel olarak indüklendi ve bu, A549 hücrelerinde hücre ölümünün aktivasyonunu gösterdi. p53'ün JE tarafından aktivasyonu, akciğer, karaciğer ve prostat kanseri hücrelerinde Akt yolunun inhibisyonu ile aynı anda görüldü. Bu ve daha önceki sonuçlar, hücre ölümünün aktivasyonunun ardıç polifenollerinin birleşik etkileri aracılığıyla gerçekleştiğini göstermektedir [ 1 , 3 ]. Benzer güçlenme ve etkileşim, kanser hücrelerini doksorubisin, 5-florourasil ve gemsitabin gibi sitostatik ilaçlara duyarlı hale getiren statinler için de rapor edilmiştir [ 12 ,13 , 14 ] ve bitki özleri veya bileşikleri [ 1 , 15 ]. İlginç bir şekilde JE, A549 hücrelerinde 5-florourasil ve gemsitabinin antitümör etkilerini güçlendirebildi. İlaç kombinasyonlarının kullanımı sinerjik terapötik etkilere sahip olabilir, seçiciliği iyileştirebilir ve yan etkileri azaltabilir [ 22 ].

                  p53 aktivasyonu ve Akt inhibisyonunun JE'nin hücre ölümünü teşvik eden mekanizmalar olduğu ve özellikle [ 23 , 24 ] sitostatik ilaçlarla birlikte kanser hücrelerinde ilaç kombinasyonlarının mekanizmalarını incelemek için potansiyel bir modeli temsil ettiği öne sürülmektedir . Mevcut sonuçların kesin mekanizmaları hala bilinmemektedir. Apoptoz ve ilaç duyarlılığının düzenlenmesinde PI3K/Akt, p53 ve PTEN aktivitelerinin etkileşimleri, örneğin küçük hücreli olmayan akciğer kanseri hücre dizilerinde bulunmuştur [ 23 , 24 ]. Bitki özleri ve bileşikleri, kanser ve diğer hastalıklara karşı ilaç geliştirme için potansiyel bir kaynak olarak geniş ilgi görmüştür [ 25].]. Bu nedenle, JE'nin p53'ü aktive etmek, PI3K/Akt yolunu inaktive etmek ve hücre ölümünü yeniden aktive etmek için birkaç amplifiye edici hedefi var gibi görünüyor.

                  Git: 4. Malzemeler ve Yöntemler

                  4.1. Bitki Malzemesi ve Reaktifler


                  Baharat için yetiştirilen olgun ve kurutulmuş ardıç meyveleri ( Juniperus communis L.), Paulig Ltd, Finlandiya'dan ( http://www.pauliggroup.com ) ticari olarak elde edildi . Öğütülmüş ardıç meyvelerinin özleri, daha önce tarif edildiği gibi hazırlandı [ 17 ]. Kısaca, özütleme, üç saatlik bir hidrodistilasyon sırasında kaynar su ile gerçekleştirildi ve uçucu yağların çıkarılmasıyla sonuçlandı. Sulu ekstrakt süzüldü, dondurularak kurutuldu ve 4 °C'de saklandı. Ekstrakt verimi 422 mg/g öğütülmüş çilek olmuştur. Antikanser ilaçları 5-florourasil (5-Fu) ve gemsitabin, sırasıyla Sigma-Aldrich'ten (St. Louis, MO, ABD) ve Eli Lilly'den (Indianapolis, IN, ABD) satın alındı. 4.2. Hücre kültürü


                  İnsan karsinoma hücre çizgileri A549, DU145, 22RV1 ve HepG2, ATCC'den (Manassas, VA, ABD) satın alındı. A549 hücre çizgisi, vahşi tip p53 ve Akt genotipi ile karakterize edilir. DU145, mutasyona uğramış bir p53 ve vahşi tip PTEN'e sahiptir; 22RV1, vahşi tip p53 ve PTEN'e sahiptir; ve HepG2, vahşi tip p53 genine ve PTEN'e sahiptir. A549 ve DU145 hücreleri, %10 inaktive edilmiş fetal bovin serumu (FBS) ve 1 mM sodyum piruvat ile DMEM içinde büyütüldü. 22RV1 hücreleri, %10 FBS ile takviye edilmiş Sigma-Aldrich'ten (St. Louis, MO, ABD) RPMI-1640 içinde büyütüldü. HepG2 hücreleri MEM'de Earl tuzları ve l ile büyütüldü.- 1 mmol/L sodyum piruvat, esansiyel olmayan amino asitler ve %10 inaktive edilmiş FBS ile takviye edilmiş glutamin. Ortam, penisilin-streptomisin ile desteklendi. Serum açlığı çeken hücreler, 24 saat boyunca %0.1 serum ile desteklenmiş ortam ile kültürlendi. DMSO, hücrelere eklendiğinde <%0.4'lük nihai konsantrasyonda 5-florourasil ve gemsitabini çözmek için kullanıldı. DMSO'nun hiçbir etkisi gözlenmedi. 4.3. Western Blotlama


                  Hücreler PBS ile yıkandı ve IPB-7 tamponu (trietanolamin-HCl (TEA), 1 M, pH 7.8; NaCl, 5 M; sodyum deoksikolat, %4; Igepal CA-630 veya Nonidet P-40, %10) içinde parçalandı. inhibitörlü (1 mg/mL fenilmetilsülfonil florür, 0.1 mg/mL tripsin inhibitörü, 1 mg/mL aprotinin, 1 mg/mL leupeptin, 1 mg/mL pepstatin, 1 mmol/L Na 3 –VO 4ve 1 mmol/L NaF. Numuneler SDS-PAGE'ye tabi tutuldu ve bir PVDF membranı (Bio-Rad, Hercules, CA, ABD) üzerine lekelendi. Protein bantları, Santa Cruz Biotechnology, Inc.'den (Santa Cruz, CA, ABD) Ser473 veya Thr308, p53, PARP ve Cdk2 tortusunda fosforile edilmiş Akt'ye karşı antikorlar kullanılarak problanmıştır; Cell Signaling'den pGSK3p Ser9 (Beverly, MA, ABD); PHLPP1 ve PHLPP2 antikorları, Bethyl Laboratories Inc.'den (Montgomery, TX, ABD) alınmıştır. Proteinler, ECL prosedürü (Amersham Biosciences, İsveç) ile görselleştirildi. Sonuçlar NIH Image 1.62 yazılımı ile analiz edildi. 4.4. konfokal mikroskopi


                  Hücreler %4 formaldehit ile sabitlendi, %2 BSA tamponu içinde %0.2 Triton X-100 ile geçirgenleştirildi. İmmün boyama, fare monoklonal p53 antikoru kullanılarak yapıldı. İkincil antikorlar, Alexa 488 (NY, ABD'deki ThermoFisher Scientific'ten (Kat. Numarası: A1101) ile konjuge edildi. Hücreler, x63 plan A ile donatılmış bir Zeiss LSM 510 META konfokal lazer tarama mikroskobu (Zeiss, Oberkochen, Almanya) ile analiz edildi. yağa daldırmalı lens 488 nm'de bir argon lazeri uyarıldı ve floresan görüntüleri 500 ila 550 nm arasında kaydedildi Belirtilen proteinlerin lokalizasyonu, çok izli modda Zeiss LSM görüntüleme yazılımı ile ölçüldü. 4.5. MTT Testi


                  Hücre canlılığı, MTT tetrazolyum tuzunu formazana dönüştürmek için hücresel mitokondriyal kapasiteyi saptayan 3-(4,5-dimetiltiazol-2il)-2,5-difeniltetrazolyum bromür (MTT) tahlili ile belirlendi. Hücreler, MTT (Sigma-Aldrich, St. Louis, MO, ABD) içeren ortam ile 4 saat süreyle inkübe edildi. Hücreler daha sonra DMSO içinde parçalandı. Absorbans 570-620 nm'de ölçüldü. 4.6. İstatistiksel analiz


                  İstatistiksel analiz Student's t -testi kullanılarak yapıldı. Veriler ortalama ± SD olarak sunuldu. Deneyler, farklı hücre grupları ile en az üç kez yapıldı. Sonuçlar, p ≤ 0.05'te istatistiksel olarak anlamlı kabul edildi .

                  5. Sonuçlar
                  Sonuç olarak, birkaç bitki fenolik bileşiği içeren JE, PI3K/Akt inhibisyonu ve p53 yollarının aktivasyonu yoluyla A549 küçük olmayan akciğer kanseri, HepG2 hepatokarsinom ve 22RV1 ve DU145 prostat kanseri hücrelerinde doza bağlı bir şekilde hücre ölümünü aktive etti. Bu düzenlemeye ardıçın Akt fosforilasyonu/defosforilasyonu, PHLPP1 ve PHLPP2, pGsk3 ve bozulmamış/parçalanmış PARP ve p53 aktivasyonu üzerindeki etkileri aracılık etti. Mevcut sonuçlar ayrıca JE'nin farklı kökenlerden ve spesifik hedef mekanizmalar yoluyla çeşitli kanser hücrelerinde hücre ölümünü teşvik edici etkilere sahip olduğunu göstermiştir.


                  Git: Kısaltmalar
                  A549 Küçük olmayan akciğer kanseri hücre hattı
                  DMEM Dulbecco'nun değiştirilmiş Eagle ortamı
                  DMSO Dimetil sülfoksit
                  DU145 Prostat kanseri hücre hattı
                  HepG2 Hepatoselüler karsinom hücre hattı
                  MTT 3-(4,5-Dimetiltiazol-2il)-2,5-difeniltetrazolyum bromür
                  P53 transkripsiyon faktörü
                  pAkt fosforile Akt
                  PARP Poli (ADP-riboz) polimeraz
                  PBS fosfat tamponlu salin
                  pGsk3Ser9 Fosforillenmiş glikojen sentaz kinaz-3
                  PHLPP1/2 fosfatazlar
                  PI3K fosfatidilinositol-3-kinaz
                  PIP3 Fosfatidilinositol 3,4,5-trifosfat
                  ÇAY trietanolamin-HCl
                  Git: Yazar Katkıları


                  AR ve AG, tasarım, deneyler ve yazıya katkıda bulundu, ABD, çalışmaların ve el yazmasının tasarımına ve yazılmasına katkıda bulundu.

                  Git: Finansman


                  Bu araştırma Finlandiya'daki İsveç Kültür Vakfı tarafından finanse edildi.

                  Git: Çıkar çatışmaları


                  Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

                  Git: Referanslar

                  1. Lantto TA, Colucci M., Závadová V., Hiltunen R., Raasmaja A. SH-SY5Y ve CV1-P hücrelerinde fesleğen, ardıç, defne ve maydanozdan kurkumin, resveratrol ve bitki özlerinin sitotoksisitesi. Gıda Kimyası 2009; 117 :405–411. doi: 10.1016/j.foodchem.2009.04.018. [ CrossRef ] [ Google Akademik ]
                  2. Lantto TA, Dorman HJD, Shikov AN, Pozharitskaya ON, Makarov VG, Tikhonov VP, Hiltunen R., Raasmaja A. Sibirya çamının kimyasal bileşimi, antioksidan aktivitesi ve hücre canlılığı etkileri ( Pinus sibirica Du Tour) özü. Gıda Kimyası 2009; 112 :936–943. doi: 10.1016/j.foodchem.2008.07.08. [ CrossRef ] [ Google Akademik ]
                  3. Lantto TA, Laakso I., Dorman HJ, Mauriala T., Hiltunen R., Kõks S., Raasmaja A. Cellular Stress and p53-Associated Apoptosis by Juniperus communis L. İnsan SH-SY5Y Nöroblastom Hücrelerinde Berry Özü Tedavisi . Int. J. Mol. bilim 2016; 17 :1113. doi: 10.3390/ijms170711113. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  4. Iurlaro R., León-Annicchiarico CL, Muñoz-Pinedo C. Onkogenler ve Tümör Bastırıcılar Tarafından Kanser Metabolizmasının Düzenlenmesi. Met. enzimol. 2014; 542 :59-80. [ PubMed ] [ Google Akademik ]
                  5. Whibley C., Pharoah PDP, Hollstein M. p53 polimorfizmleri: Kanser etkileri. Nat. Rev. Kanser. 2009; 9 :95-107. doi: 10.1038/nrc2584. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  6. Bieging KT, Mello SS, Attardi LD p53 aracılı tümör baskılama mekanizmalarının çözülmesi. Nat. Rev. Kanser. 2014; 14 :359–370. doi: 10.1038/nrc3711. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  7. Rodgers SJ, Ferguson D., Mitchell C., Ooms L. Fosfoinositid fosfatazlar tarafından kanserde PI3K efektör sinyallemesinin düzenlenmesi. Biosci. Rep. 2017; 12 :BSR20160432. doi: 10.1042/BSR20160432. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  8. O'Neill AK, Niederst MJ, Newton AC Hayatta kalma sinyal yollarının fosfataz PHLPP tarafından baskılanması. ŞUBAT J. 2013; 280 :572–583. doi: 10.1111/j.1742-4658.2012.08537.x. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  9. Tiligada E. Hücresel stres, hücre döngüsü ve antikanser ajanlar arasındaki çapraz konuşma sırasında nükleer translokasyon. Kör. Med. Kimya 2006; 13 :1317-1320. doi: 10.2174/092986706776872952. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  10. Grzechnik AT, Newton AC PHLPP Tarih boyunca: PHLPP fosfatazların yaşamında on yıl. Biyokimya. Soc. Trans. 2016; 44 :1675-1682. doi: 10.1042/BST20160170. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  11. O'Brate A., Giannaakou P. p53 konumunun önemi: Nükleer mi yoksa sitoplazmik posta kodu mu? İlaç Direnci. Güncellemeler 2003; 6 :313-322. doi: 10.1016/j.drup.2003.10.004. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  12. Roudier E., Mistafa O., Stenius U. Statinler, memeli rapamisin hedefi (mTOR) aracılı Akt sinyalinin inhibisyonunu indükler ve p53 eksikliği olan hücreleri sitostatik ilaçlara duyarlı hale getirir. Mol. Kank. orada. 2006; 5 doi: 10.1158/1535-7163.MCT-06-0352. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  13. Mistafa O., Stenius U. Statinler, pankreas kanseri hücrelerinde P2X7 reseptörü aracılığıyla Akt/PKB sinyalini inhibe eder. Biyokimya. farmakol. 2009; 78 :1115–1126. doi: 10.1016/j.bcp.2009.06.016. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  14. Miraglia E., Högberg J., Stenius U. Statinler, pAkt sinyal yolunun modifikasyonları yoluyla antikanser etkileri sergiler. Int. J. Oncol. 2012; 40 :867-875. doi: 10.3892/ijo.2011.1223. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  15. Barron CC, Moore J., Tsakiridis T., Pickering G., Tsiani E. Şarapla insan akciğer kanseri hücre çoğalmasının ve hayatta kalmasının engellenmesi. Kanser Hücresi İnter. 2014; 14 :6. doi: 10.1186/1475-2867-14-6. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  16. Moore J., Megaly M., MacNeil AJ, Klentrou P., Tsiani E. Biberiye özütü, Akt/mTOR/p70S6K aktivasyonunu azaltır ve A549 insan akciğer kanseri hücrelerinin çoğalmasını ve hayatta kalmasını engeller. Biyomedya. Eczacı. 2016; 83 :725–732. doi: 10.1016/j.biopha.2016.07.043. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  17. Hinneburg I., Dorman HJD, Hiltunen R. Seçilmiş mutfak bitkilerinden ve baharatlardan elde edilen ekstraktların antioksidan aktiviteleri. Gıda Kimyası 2006; 97 :122–129. doi: 10.1016/j.foodchem.2005.03.028. [ CrossRef ] [ Google Akademik ]
                  18. Das A., Banik NL, Ray SK Flavonoidlere maruz kalan insan malign nöroblastom SH-SY5Y hücrelerinde kalpain ve kaspaz kaskadlarının katılımı ile apoptoz mekanizması. Int. J. Kanser. 2006; 119 :2575–2585. doi: 10.1002/ijc.22228. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  19. Karmakar S., Davis KA, Choudhury SR, Deeconda A., Banik NL, Ray SK Bcl-2 inhibitörü ve apigenin, insan malign nöroblastom hücre dizilerinde sinerjistik olarak çalıştı ve dışsal ve içsel yolların aktivasyonu ile apoptozu arttırdı. Biyokimya. Biyofiz. Araş. Komün. 2009; 388 :705–710. doi: 10.1016/j.bbrc.2009.08.071. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  20. Lee ER, Kang YJ, Choi HY, Kang GH, Kim JH, Kim BW, Han YS, Nah SY, Paik HD, Park SY, et al. İnsan Akciğer Epitel Karsinomu A549 Hücrelerinde Sentetik Naringenin Türevleri Tarafından Apoptotik Hücre Ölümünün İndüklenmesi. Biol. Eczacılık Boğa. 2007; 30 :2394–2398. doi: 10.1248/bpb.30.2394. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  21. Xingyu Z., Peijie M., Dan P., Youg W., Daojun W., Xinzheng C., Xijun Z., Yangrong S. Quercetin, Aurora B kinazını hedefleyerek akciğer kanseri büyümesini baskılar. Kank. Med. 2016; 5 :3156–3165. doi: 10.1002/cam4.891. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  22. Lehár J., Krueger AS, Avery W., Heilbut AM, Johansen LM, Price ER, Rickles RJ, Short GF, Staunton JE, Jin X., ve diğerleri. Sinerjik ilaç kombinasyonları, terapötik olarak ilgili seçiciliği geliştirme eğilimindedir. Nat. Biyoteknoloji. 2009; 27 :659–666. doi: 10.1038/nbt.1549. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  23. Tsai JY, Tsai SH, Wu CC Kemopreventif izotiyosiyanat sülforafan, küçük hücreli olmayan insan akciğer kanseri hücrelerinde anoikis direncini ve ankrajdan bağımsız büyümeyi azaltır. Toksikol. Uygulama farmakol. 2019; 362 :116–124. doi: 10.1016/j.taap.2018.10.020. [ PubMed ] [ CrossRef ] [ Google Akademik ]
                  24. Guntur VP, Waldrep JC, Guo JJ, Selting K., Dhand R. Artan P53 Proteini Küçük Hücreli Olmayan Akciğer Kanserini İn Vitro Paklitaksel ve Cisplatine Karşı Duyarlılaştırır. Antikanser Araş. 2010; 30 :3557–3564. [ PubMed ] [ Google Akademik ]
                  25. Gorzynik-Debicka M., Przychodzen P., Cappello F., Kuban-Jankowska A., Gammazza AM, Knap N., Wozniak M., Gorska-Ponikowska M. Zeytinyağı ve Bitki Polifenollerinin Sağlığa Potansiyel Faydaları. Int. J. Mol. bilim 2018; 19 :547. doi: 10.3390/ijms19030686. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]

                  Yorum yap

                  Hazırlanıyor...
                  X