Duyuru

Collapse
No announcement yet.

Trabzon Hurması, Cennet meyvesi, Diospyros kaki

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Trabzon Hurması, Cennet meyvesi, Diospyros kaki

    Gyeongnam vilayetindeki olgunluk aşamalarına dayalı olarak çeşitli kültür türlerinin büzücü hurmalarının ( Diospyros kaki Thunb.) Saplarının anti-enflamatuar aktiviteleri

    Jieun Choi , 1, 2 Mi Jeong Kim , 3 Richard Komakech , 1, 2, 4 Haiyoung Jung , 3 ve Youngmin Kang 1, 2
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
    Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır .

    İlişkili Veriler
    Veri Kullanılabilirliği Beyanı

    Öz
    Arka fon
    Doğal ürünler, enflamatuar durumların önlenmesi ve tedavisi ile ilgili olarak insan sağlığında önemli bir rol oynar. Büyük tıbbi potansiyele sahip bitkilerden biri , ağırlıklı olarak Kore, Japonya ve Çin gibi Asya ülkelerinde yetiştirilen Diospyros kaki'dir . Sıkılaştırıcı D. kaki , Ripene d olana kadar buruk bir tada sahip yabani bir türdür . kaki kaliks, büzücü D. kaki'nin saplarından yapılan geleneksel bir Kore tıbbıdır (TKM) ve yatak ıslatma, kusma ve hıçkırık tedavisinde kullanılır. Bu çalışma, kültivar türleri ve olgunluk aşamalarına dayalı olarak büzücü D. kaki saplarının potansiyel anti-enflamatuar aktivitelerini araştırmak için tasarlanmıştır .

    Yöntemler
    Lokal büzücü D. kaki kültivar türlerinin sap ekstraktlarının anti-enflamatuar etkileri RAW 264.7 hücreleri üzerinde değerlendirildi. Hücre canlılığı, bir Hücre Sayım Kiti-8 ( CCK8) yöntemi kullanılarak ölçüldü . Anti-enflamatuar etkiler, süpernatanın nitrik oksit (NO) konsantrasyonu ölçülerek belirlendi. Hücresel sinyal yolakları, indüklenebilir nitrik oksit sentazın (iNOS) kantitatif polimeraz zincir reaksiyonları ile belirlendi . İNOS ve fosfo-p65'in protein ekspresyonu, western blot kullanılarak belirlendi ve p65'in nükleer lokalizasyonu, RAW 264.7 hücrelerinde eş odaklı görüntüleme kullanılarak belirlendi.

    Sonuçlar
    Aşama 1 (8-9 ay) numunelerinin hepsinin yüksek oranda tanik asit içeriği gösterdiğini ve Gojongsi (Hamyang) saplarının en yüksek içeriğe sahip olduğunu bulduk. Aşama 1 numuneleri aynı zamanda en yüksek NO üretimi inhibisyonunu göstermiştir. İNOS ve fosforile p65 ekspresyonundaki ve p65'in nükleer lokalizasyonundaki azalmalar doza bağımlıydı. Tüm ekstreler 100 ug / ml konsantrasyonun altında toksik değildir.

    Sonuç
    Bu çalışma, büzücü D. kaki'deki tanik asit içeriğindeki değişikliklere ve bunların olgunluk aşamalarıyla ilişkili olarak anti-enflamatuar etkilerine ilişkin fikir vermektedir . Bu sonuçların, doğu tıbbının etkinliğinin doğrulanmasında ve tıbbi kullanım için uygun hasat zamanlamasında yararlı olması beklenmektedir.

    Anahtar Kelimeler: Antiinflamatuar, Sıkılaştırıcı D. kaki , Çeşitler, Kore geleneksel tıbbı

    Arka fon
    Enflamasyon, diyabet, kardiyovasküler hastalıklar, kanser, artrit, obezite, otoimmün hastalıklar ve ayrıca inflamatuar bağırsak hastalığı dahil olmak üzere çok sayıda kronik hastalık ve bozukluğun ilerlemesinde ana faktörlerden biridir [ 1 ]. Etkilenen bölgedeki hasarı sınırlandırarak enfeksiyondan veya doku hasarından sonra bir ilk savunma sağlayan çeşitli hücreleri ve sitokinleri içerir [ 2 ]. Makrofajların, edinilmiş bağışıklık ve doğuştan gelen bağışıklık gibi çeşitli konakçı yanıtlarında rol oynadığı ve aynı zamanda homeostaza dahil olduğu bilinmektedir [ 3 ]. Enfeksiyonun erken evrelerinde inflamatuar reaksiyon sırasında nitrik oksit (NO) ve sitokin üretilir ve biyolojik savunma mekanizmalarında önemli bir rol oynar [ 4]. İnflamasyon sentetik ilaçlar kullanılarak tedavi edilebilmesine rağmen, antisitokin gibi bazı antiinflamatuvar ilaçların çeşitli kinazların aktivitesini bloke etme gibi bazı olumsuz etkileri vardır, bu nedenle enfeksiyonlara karşı konak savunmasında önemli bir azalma ile sonuçlanır [ 1 ]. Bu yan etkilerden bazıları ve mevcut antiinflamatuvar tedavilerin sağlık sorunları nedeniyle, doğal antiinflamatuvar takviyelerin kullanımı daha popüler hale gelmektedir [ 1 ]. Gerçekten de, doğal ürünler enflamatuar durumlar [önlenmesi ve tedavisi ile ilgili olarak, insan sağlığında önemli bir rol oynar 5 - 7]. Sonuç olarak, güvenli ve etkili terapötik ajanlar olarak hizmet etmek için doğal etkili antiinflamatuvar ajanlara olan talep artan bir ilgi çekmiştir [ 8 ]. Bitkilerin antiinflamatuvar potansiyeli, saponinler, glikozitler gibi ikincil metabolitlerin ve tanenler ve flavonoidler dahil fenolik bileşiklerin varlığına bağlanmaktadır [ 9 ]. Ek olarak, bir fenol bileşiği olan tanin gibi bu fitokimyasallar, anti-mutajenik ve anti-kanser etkileri gibi çeşitli fizyolojik fonksiyonlara sahiptir [ 10 , 11 ]. Tanik asit özellikle yüksek bir moleküler ağırlığa sahiptir ve acı tadına neden olan birçok fenolik hidroksil grubu içerir [ 12]. Aslında tat, dil yüzeyindeki tanen ve proteinler arasındaki etkileşimin neden olduğu dehidrasyondan kaynaklanmaktadır [ 13 ]. Robbins ve arkadaşları [ 14 ] tarafından yapılan bir çalışmada , tanenlerin bitkilerin büyük otçullara karşı savunma mekanizmalarında kullandıkları ikincil metabolitlerden biri olduğu bildirilmiştir.

    Trabzon hurması ( Diospyros kaki Başparmak) Ailesi Ebenaceae, serbest radikalleri süpürme kabiliyeti nedeniyle inflamatuar tepkileri iyileştirme potansiyeline sahip bitkilerden biridir [ 15 ]. Bu önemli bitki uzun yıllardır Asya ülkelerinde, özellikle Kore, Çin ve Japonya'da yetiştirilmektedir [ 16 ]. Güney Kore'de, D. kaki'nin çoğu, Gapyeong (Gyeonggi), Byeonghwa (Gyeongbuk) ve Jecheon (Chungbuk) iç bölgelerinde ve kuzey ve doğu kıyılarında [ 17 ] dağılmıştır . Bansi (Chungdo), Danseongsi ve Wolhasi gibi D. kaki çeşitleri, yerel sıcaklık ve toprak koşullarında ekime daha uygun hale getirilmiştir [18 ]. Aslında araştırmalar, D. kaki'nin soğuğa karşı diğer meyve ağaçlarından daha düşük bir toleransa sahip olduğunu göstermiştir [ 19 ]. D. kaki , tatlı çeşitler ve büzücü çeşitler olarak sınıflandırılabilir [ 20 ]. Sıkılaştırıcı D. kaki , suda çözünebilen yüksek tanen içeriğini olgunlaştırarak veya yapay olarak çıkararak burukluğunu azalttıktan sonra yenilebilir [ 21 , 22 ]. D. kaki eti yüzyıllardır yenilmekte ve son zamanlarda meyveler reçel ve sirke haline getirilmektedir [ 23 - 25 ]. Kurutulmuş yapraklar birçok toplulukta yeşil çay olarak da kullanılmaktadır [ 26]. D. kaki'nin tıbbi potansiyeli, içinde bulunan tanenler, flavonoidler, terpenoidler, steroidler, karotenoidler, gallik asit ve protokatekuik asit gibi çeşitli biyoaktif bileşiklere atfedilir [ 27 ]. Birçok fenolik bileşiğin antioksidatif, antiinflamatuvar, anti-kanserojen, anti-mutajenik ve kardiyoprotektif olduğu bilinmektedir [ 28 , 29 ]. D. kaki'nin klinik farmakokinetiği ve saplarının etkinliği eski literatürde iyi bildirilmiştir [ 30 ]. Kaki kaliks, D. kaki'nin meyvesine yapıştırılmış kaliksten yapılan geleneksel bir Kore tıbbıdır (TKM) [ 31]. Korean Herbal Pharmacopoeia'nın 4. baskısında Kaki kaliks, D. kaki'nin olgunlaşmış veya olgunlaşmış meyvesine bağlı kaliks olarak tanımlanmaktadır . Çalışmalar, D. kaki'nin kan damarları üzerinde olumlu etkileri, akciğer güçlenmesi ve ayrıca bronşiyal hastalıkların hafifletilmesi için önemli olduğunu göstermiştir [ 32 , 33 ]. TKM'de, büzücü D. kaki'nin sapları grip, ateroskleroz ve kalp hastalıklarının tedavisinde kullanılmıştır [ 32 , 34 ]. Ek olarak, D. kaki sapları da hıçkırık tedavisi için TKM'de kullanılmıştır [ 32 , 34]; inflamasyonun nedenlerinden biri olduğu bilinen bir durum [ 35 ].

    Çeşitli kronik inflamasyonlarla ilişkili hastalıkların baskılanması için doğal kaynaklardan terapötik hedefler geliştirmek için bir dizi çalışma yapılmış olmasına rağmen [ 1 ], büzücü D. kaki saplarının anti-inflamatuar aktiviteleri üzerine hiçbir çalışma yapılmamıştır. Gyeongnam eyaletindeki olgunluk aşamalarına göre çeşitli kültür türleri. Bu nedenle bu çalışma , çeşitli bölgelerden seçilmiş birkaç büzücü D. kaki çeşidinin, tanik asit içeriği ve anti-enflamatuar etkileri de dahil olmak üzere bitkisel ilaçlar olarak etkinliklerine dayalı olarak optimum hasat zamanını belirlemek için gerçekleştirildi . Ek olarak, tanik asit konsantrasyonu ve antiinflamatuar potansiyelindeki varyasyonları anlamakD. kaki , endüstri ve geleneksel doğu tıbbının gelişimi için önemli olabilir.

    Yöntemler
    Büzücü D. kaki koleksiyonu
    Bu çalışmada, sırasıyla Hamyang, Hamyang ve Miryang bölgelerinden üç yerel büzücü D. kaki çeşidi (Gojongsi, Danseongsi ve Bansi) toplanmıştır (aşama 1, 19 Ağustos; aşama 2, 14 Ekim; ve aşama 3, 20 Ocak). Örnekler Kore'nin Gyeongsangnam kentindeki Kore Orman Çevre Araştırma Enstitüsünde tanımlandı ve Kore Doğu Tıbbı Enstitüsü'ndeki halka açık bir herbaryuma bırakıldı ve KIOM201501015023- KIOM201501015025 numaralı fişlerle verildi. Büzücü D. kaki örnekler bölgesel özelliklere ve olgunluğa göre toplanmış ve saplar kesilip olgunlaşmamış (Ağustos'tan Eylül'e kadar toplanmış), olgun aşama (Ekim'den Kasım'a kadar toplanmış) ve kurutulmuş aşama (Aralık'tan Ocak'a kadar toplanmış) olarak sınıflandırılmıştır.

    Büzücü D. kaki'nin saplarından ekstraksiyon
    Bu deneyde kullanılan 9 örnek, Hamyang Gojongsi, Hamyang Danseongsi ve Miryang Bansi'den elde edilen 3 olgunlaşmamış sap örneği, 3 olgun sap örneği ve 3 kuru sap örneğidir. Ekstraksiyon işlemi için kullanılan etanol ve metanol reaktifleri, yüksek performanslı sıvı kromatografi (HPLC) dereceli (JT Baker Inc., Phillipsburg, NJ, ABD) olarak satın alındı. Çözücüler ve numuneler, kullanılmadan önce 0.2 um'lik bir membran filtre (PALL Corporation, Ann Arbor, MI, ABD) ile filtre edildi. 9 örneğin her biri için, 10 g kurutulmuş öğütülmüş örnek 72 saat 250 mL% 70 etanol ile maserasyon yöntemi kullanılarak ekstrakte edildi. Ekstreler filtre kağıdı (ADVANTEC, 110 mm, Toyo Robni kaisha, Japonya) kullanılarak süzüldü ve EYELA N-1200B (Tokyo Rikakikai Co. Ltd., Japonya) verimli döner buharlaştırıcı. Konsantre ekstrakt daha sonra vakumla kurutuldu. Daha sonra 50 mg / mL çözelti, farklı numunelerden her bir özün ayrı ayrı% 80 metanol içerisinde çözündürülmesiyle elde edildi. HPLC analizi için numuneler, enjeksiyon ve analizden önce 0.45 um membran filtre (PALL Corporation, Ann Arbor, MI, ABD) kullanılarak filtre edildi.

    HPLC kullanılarak tanik asit içeriklerinin analizi
    Bu çalışmada bir HPLC sistemi (Alliance® HPLC, Waters Corporation, Manchester, UK) kullanılmıştır. Kolon bir Phenomenex Luna C18 (2) (250 × 4.6 mm, 5 μm), kolon sıcaklığı 40 ° C ve numune sıcaklığı 25 ° C idi. % 0.1 asitli HPLC dereceli su ve% 0.1 asitli HPLC dereceli Metanolden oluşan mobil faz kullanıldı. Kalibrasyon eğrileri 5 konsantrasyon (25, 50, 100, 150 ve 200 ug / mL) tanik asit standardı (Sigma-Aldrich Co., Inc. FLUKA, Trace SELECT, ABD) kullanılarak analiz edildi. Mobil fazın akış hızı 1.0 mL / dk'ya ayarlandı, standart ürünün enjeksiyon miktarı 10 μL'ye ayarlandı ve 9 örneğin enjeksiyon miktarı 20 μL'ye ayarlandı. Tüm numuneler için analiz süresi toplamda 30 dakikaya ayarlandı. Analitik dalga boyu 190 ila 400 nm'de ölçüldü ve 220 nm'de analiz edildi. Her bileşenin UV spektrumu ölçüldü. HPLC ile ilgili tüm deneyler üç kez tekrarlandı ve içerik analizi ortalama bir değerle tamamlandı.

    RAW 264.7 hücrelerinin ve hücre canlılığı analizinin hazırlanması (CCK-8 testi)
    RAW 264.7 makrofajlar% 5 CO, 37 ° C 'de, RPMI,% 10 cenin sığır serumu (FBS) ve% 1 antibiyotik içeren 1640 ortamında (WelGENE Daegu, Kore) içinde kültürlenmiştir 2 atmosfer. RAW 264.7 makrofajları, 24 saat boyunca farklı olgunluklarda çeşitli sap ekstresi konsantrasyonları (0, 10, 50, 100, 200, 500 ve 1000 μg / ml) ile muamele edildi. RAW 264.7 makrofaj hücrelerinin substratlar üzerindeki proliferasyonu, hücre sayma kiti analizi (CCK-8, Dojindo, Kumamoto, Japonya) ile belirlendi. Bütün örnekler, 5 x 10 bir yoğunluğa sahip 96 oyuklu bir plaka içerisine yerleştirildi ve tohumlanmıştır 4 de / hücreleri. Absorbans, bir ELISA plaka okuyucu kullanılarak 450 nm'de ölçüldü.

    Western analizi kullanılarak NO tahlili ve immünoblotlama
    RAW 264.7 hücre hatlarından üretilen NO seviyesi, ticari olarak temin edilebilen bir NO saptama kiti (iNtRON, Inc., Seoul, Kore) kullanılarak belirlendi. RAW 264.7 hücreleri, 1 saat süreyle sap özleri (0, 10, 20, 50 ve 100 ug / ml'de) ile ön işleme tabi tutuldu, ardından lipopolisakkaritlerle (LPS, 1 ug / ml) 24 saat süreyle inkübe edildi. Bütün örnekler, 1 x 10 bir yoğunluğa sahip 48 oyuklu bir plaka içerisine yerleştirildi ve tohumlanmıştır 5hücreler / kuyu. 24 saat inkübe edildikten sonra, 100 uL süpernatan toplandı ve üç kopya halinde oyuklara eklendi; Her kuyuya 50 uL N1 tamponu ilave edildi ve plaka, oda sıcaklığında 10 dakika inkübe edildi. Daha sonra 50 ul N2 tamponu ilave edildi ve nihai reaksiyon, oda sıcaklığında 10 dakika inkübe edildi. Absorbans, çok plakalı bir okuyucu (Lambda Bio-20; Beckman Coulter, Inc., Brea, CA, ABD) kullanılarak 540 nm'de ölçüldü.

    Süpernatanın nitrit konsantrasyonu, bir nitrit standart eğrisi kullanılarak belirlendi. Western blot analizi için RAW 264.7 hücreleri, 1 saat süreyle sap ekstraktları (0, 10, 20, 50 ve 100 ug / ml'de) ile ön işleme tabi tutuldu, ardından 24 saat süreyle LPS (1 ug / ml) ile inkübasyon yapıldı. Bütün örnekler, 1 x 10 bir yoğunluğa sahip bir 6-yuvalı plaka içine yerleştirilmiş ve tohumlanmıştır 6hücreler / kuyu. Hücreler buzla soğutulmuş fosfat tamponlu salin (PBS) ile hasat edildi ve liziz tamponunda (50 mM Tris-HCl, pH 7.5, 150 mM NaCl,% 1 v / v IGEPAL® CA-630, 1 mM PMSF, 1) lize edildi mM sodyum florür ve 10 ug / ml aprotinin ve leupeptin). Hücre lizatları, 4 ° C'de 15 dakika 13,000 rpm'de santrifüjlenerek toplandı. Toplanan süpernatanların protein konsantrasyonu, bir BCA ™ protein deney kiti (Pierce, Rockford, IL, ABD) kullanılarak belirlendi. Tüm lizatlar, SDS-PAGE jeli üzerine aynı miktarda protein ile yüklendi. Proteinler daha sonra bir PVDF membranına (Millipore, Bedford, MA, ABD) aktarıldı. 27 ° C'de 40 dakika boyunca 1xPBST'de% 5 w / v yağsız süt ile bloke edildikten sonra,

    RNA izolasyonu ve kantitatif gerçek zamanlı PCR
    Toplam RNA, üreticinin talimatlarına göre bir RNeasy Mini Kit (Qiagen, Gaithersburg, MD, ABD) kullanılarak RAW 264.7 hücre hatlarından ekstrakte edildi. Hücreler 1 x 10 bir yoğunlukta plakalandı 66 kuyucuklu bir plakada hücre / oyuk ve 1 saat boyunca 0, 10, 50 ve 100 ug / ml konsantrasyonlarda sap özleri ile ön işleme tabi tutuldu. Daha sonra hücreler, 24 saat boyunca LPS (1 ug / ml) ile uyarıldı. 24 saat inkübasyondan sonra hücreler soğuk PBS ile yıkandı ve toplandı. Toplam RNA'lar, bir ReverTra Ace® qPCR RT Kiti (Toyobo Co, Osaka, Japonya) kullanılarak birinci sarmal cDNA'lara ters transkripsiyona tabi tutuldu ve bir SYBR Green PCR Ana Karışımı kullanılarak gerçek zamanlı PCR (Takara Bio Inc., Shiga, Japonya) ile analiz edildi ( Takara Bio Inc., Shiga, Japonya) özel primerler ile. MRNA ekspresyon seviyesi, kontrol olarak GAPDH kullanılarak hesaplandı. Primer sekansları aşağıdaki gibiydi: indüklenebilir nitrik oksit sentaz (iNOS), ileri 5p- GGCAGCCTGTGAGACCTTTG-3 've geri 5p- GCATTGGAAGTGAAGCGTTTC-3'; GAPDH, ileri 5′-ATGCCTCCTGCACCACCA-3 ′ ve geri 5′- CCATCACGCCACAGTTTCC-3 ′.

    P65 lokalizasyonu için konfokal mikroskopi
    Sap ekstraktlarının nükleer faktör κB (NF-κB) p65'in nükleer translokasyonu üzerindeki etkisi immünofloresans ile değerlendirildi. Bu deneyler için RAW 264.7 hücreleri, 1 saat süreyle 100 ug / ml sap ekstraktları ile ön işlemden geçirildi ve 30 dakika süreyle LPS (1 ug / ml) ile işlenerek hasat edildi. Hücreler, 10 dakika süreyle 12 oyuklu plakalarda yuvarlak cam kapak fişleri üzerine kaplandı. Örnekler daha sonra soğuk PBS ile yıkandı ve oda sıcaklığında 15 dakika% 4 formaldehit içinde sabitlendi, ardından 4 ° C'de 15 dakika PBS içinde% 0.2 Triton X-100 ile geçirgenleştirildi. Hücreler, PBS içinde% 5 BSA ile 1 saat süreyle bloke edildi ve gece boyunca 4 ° C'de anti-p65 birincil antikoru ile inkübe edildi. PBS ile üç yıkamadan sonra hücreler Alexa Fluor 546-konjuge keçi-anti tavşan IgG'si (Invitrogen, Carlsbad, California, ABD) ile 1 saat oda sıcaklığında inkübe edildi ve sonra tekrar PBS ile yıkandı.

    istatistiksel analiz
    Her gruptan (deneysel ve kontrol) toplanan veriler ortalama ± SD olarak ifade edildi. Eşleştirilmemiş t-testleri (Prism programında, Graph Pad Software, San Diego, CA; iki kuyruklu, P  <0.05) deney ve kontrol grupları arasındaki farkları analiz etmek için kullanıldı.

    Sonuçlar
    HPLC kullanılarak tanik asit içeriklerinin analizi
    Farklı saplardan elde edilen özler (Şek. 1) tanik asit içeriklerini belirlemek için HPLC ile analiz edildi. Tüm örneklerin ve standart tanik asidin tutulma süresinin 6 dakika olduğu bulundu. Olgunluğa göre tanik asit içeriklerinin HPLC analizi, tanik asit içeriğinin olgunlaşmamış büzücü D. kaki'de olgun veya kurutulmuş olanlardan daha yüksek olduğunu gösterdi (Şek. 2). Şekil 1'de gösterildiği gibi. 2Hamyang Gojongsi'den kurutulmuş olgunlaşmamış büzücü D. kaki'nin sapları en yüksek tanik asit içeriğine (2.597 mg / g), ardından Hamyang Danseongsi (2.350 mg / g) ve ardından Miryang Bansi'ye (2.217 mg / g) sahipti. Tanik asit içeriği, olgunlaşmamış D. kaki saplarının en yüksek tanik asit konsantrasyonuna sahip olması ve en az kurutulmuş saplarda bulunması ile olgunluk derecesine göre azalma eğilimi göstermiştir . Miryang Bansi saplarındaki tanik asit içeriği, Hamyang Gojongsi ve Hamyang Danseongsi saplarına kıyasla, olgunlaşmamış ve olgun aşama arasında (2,217 mg / ml'den 0,615 mg / ml'ye) daha hızlı azaldı.


    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig1_HTML.jpg
    Şekil 1
    Hamyang'daki Gojongsi, Hamyang'daki Danseongsi ve Miryang'daki Bansi'nin üç farklı bölgesinden büzücü D. kaki'nin görünümü farklı mevsimlerde elde edildi. 1: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmamış olgunlaşmamış büzücü D. kaki'nin (SUIAP) sapı. 2: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmamış olgun büzücü D. kaki'nin (SUMAP) sapı. 3: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmuş büzücü D. kaki (SDAP) sapı


    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig2_HTML.jpg

    İncir. 2
    Tanik asit içeriklerinin analizi. Büzücü D. kaki'de farklı olgunluk aşamalarından sapların tanik asit içeriği . Özetlenmiş veriler, daha önce yayınlanmış olan Choi ve ark. (2017) JALS 51 (3): 49–60

    Sap ekstraktlarının hücre canlılığı üzerindeki etkileri
    Sonuçlar, 10, 50 ve 100 μg / ml'lik konsantrasyonlarda kurutulmamış olgunlaşmamış büzücü D. kaki sapı ekstresinin, kontrol hücrelerine kıyasla RAW 264.7 hücrelerinin canlılığını artırdığını ve daha yüksek konsantrasyonların (200, 500, 1000 μg / ml) olduğunu göstermektedir. ) hücrelerin canlılığı üzerinde önemli olumsuz etkilere sahipti (Şek. 3).

    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig3_HTML.jpg
    Şekil 3
    RAW 264.7 makrofaj hücrelerinde çeşitli sap ekstraktlarının hücre canlılığı üzerindeki etkileri. Hücreler, 24 saat boyunca çeşitli sap ekstraktlarının konsantrasyonları (0, 10, 50, 100, 200, 500, 1000 ug / ml) ile muamele edildi. Hücre canlılığı, CCK-8 deneyi kullanılarak ölçüldü. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001, **** P  <0.0001

    Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde NO üretimi üzerindeki etkileri
    Tüm numune özütleri, LPS ile aktive edilmiş RAW 264.7 makrofajlarında NO üretimi üzerinde önleyici etkiler gösterdi. Olgunlaşmamış büzücü D. kaki'nin saplarından elde edilen ekstreler ile muamele edilen hücreler , daha olgun sap ekstreleri ile muamele edilenlere kıyasla NO üretiminde daha büyük bir azalma gösterdi (Şek. 4).

    Resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig4_HTML.jpg
    Şekil 4
    LPS ile indüklenen RAW 264.7 hücrelerinde NO üretimi üzerindeki çeşitli sap ekstraktlarının inhibe edici etkileri. Hücreler, 1 saat süreyle çeşitli konsantrasyonlarda (0, 10, 20, 50, 100 ug / ml) sap ekstraktları ile ön işleme tabi tutuldu ve ardından LPS (1 ug / ml) ilave edildi ve 24 saat inkübe edildi. 24 saat sonra ortamdaki nitrit konsantrasyonları NO Saptama Kiti ile belirlendi. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001, **** P  <0.0001

    Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde iNOS ekspresyonu üzerindeki etkileri
    İNOS ekspresyonu, 100 μg / ml'de özüt muameleleri ile güçlü bir şekilde inhibe edildi (Şekil. 5a). Olgunlaşmamış büzücü D. kaki'den elde edilen sap ekstraktları, doza bağlı bir şekilde iNOS'un protein ekspresyonunu azaltmıştır (Şek.​(Şekil 5b).5b). Bu sonuçlar, ekstraktların protein seviyesinde olduğu kadar mRNA'da iNOS enziminin ekspresyonunu düzenlediğinden, ekstrelerin LPS ile indüklenen NO üretimi üzerindeki inhibitör etkilerinin iNOS ekspresyonunun bastırılmasından kaynaklandığını kuvvetle göstermektedir.

    Resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig5_HTML.jpg
    Şekil 5
    Sap ekstraktlarının RAW 264.7 makrofajlarında iNOS ekspresyonunun LPS ile uyarılan yukarı regülasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle farklı konsantrasyonlarda (0, 10, 50, 100 ug / ml) sap ekstraktları ile ön işleme tabi tutulmuş ve ardından 24 saat boyunca LPS (1 ug / ml) ile uyarılmıştır. a iNOS seviyeleri RT-qPCR ile ölçüldü ve GAPDH'ye normalize edildi. b Hücreler, LPS (1 ug / ml) ile 24 saat inkübasyondan önce 1 saat boyunca belirtilen konsantrasyonlarda sap özleri ile ön işleme tabi tutuldu. İNOS ve-aktin protein ekspresyonu western blot analizi ile değerlendirildi. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001

    Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde NF-κB'nin aktivasyonu üzerindeki etkileri
    Şekil 1'de gösterildiği gibi. 6a, fosforile p65, ekstraktların konsantrasyonunun artırılmasıyla önemli ölçüde inhibe edildi. Pozitif kontrol, LPS ile uyarılan RAW 264.7 hücreleri, p65'in çekirdeğe translokasyonunda dramatik artışlar gösterdi, ancak LPS ile uyarılmış NF-κB nükleer translokasyonu, sap ekstraktında ön işlemden sonra belirgin şekilde bastırıldı (Şek.​(Şekil 6b).6b). Bu sonuçlar, sap ekstraktının p65'in fosforilasyonunu ve nükleer translokasyonunu inhibe ederek NF-κB'nin aktivasyonunu inhibe ettiğini göstermektedir.

    Resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig6_HTML.jpg
    Şekil 6
    Sap ekstraktlarının LPS kaynaklı NF-kB aktivasyonu üzerindeki inhibe edici etkileri. a Sap ekstraktlarının RAW 264.7 makrofajlarda LPS ile indüklenen p65 fosforilasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle LPS (1 ug / ml) ile inkübasyondan önce, belirtilen konsantrasyonlarda 1 saat süreyle sap özleri ile ön işleme tabi tutuldu. P-p65 ve p-aktinin protein ekspresyonu, western blot analizi ile değerlendirildi. b Sap ekstraktlarının RAW 264.7 makrofajlarda LPS ile indüklenen p65 nükleer translokasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle sap ekstraktları (100 ug / ml) ile ön işleme tabi tutuldu, ardından 30 dakika süreyle LPS (1 ug / ml) ile uyarıldı. Örnekler, anti-p65 antikoru, Alexa Fluor 546 keçi anti-tavşan antikoru ve DAPI ile boyandı, ardından konfokal mikroskopi analizi ile belirlendi

    Tartışma
    D. kaki , karotenoidler, tanenler, flavonoidler, şekerler, hidrokarbonlar, lipidler, hidrokarbonlar, aromatikler, terpenoidler ve steroidler gibi çeşitli tıbbi biyoaktif bileşiklere sahiptir. Büzücü D. kaki , vahşi bir türdür ve tamamen olgunlaşana kadar buruk bir tada sahiptir, bu aşamada tanen içeriği tamamen çözünmez bir yapıya dönüşür. Suda çözünür tanen bileşenleri içeren sıkıcı D. kaki'nin acı bir tadı vardır ve tanik asidin yaşlanmayı geciktirici, kanser önleyici ve otçul savunma etkilerine sahip olduğu gösterilmiştir [ 13 , 20 , 25 ]. Büzücü D. kaki'nin saplarından ekstrakt elde ettik .ve olgunluk seviyelerine göre tanik asit içeriğini analiz etti. Farklı olgunluk aşamalarında üç tür büzücü D. kaki'nin tanik asit içerikleri, tüm olgunlaşmamış sapların, olgun ve kurutulmuş saplardan daha yüksek tanik asit içeriğine sahip olduğunu gösterdi. Bu çalışmanın sonuçları Jeong [ 18 , 34 ] tarafından yapılan bir araştırmanın sonuçlarıyla tutarlıdır ve kuruma işlemi sırasında burukluk giderildikçe D. kaki'deki tanik asit konsantrasyonunun azaldığını göstermektedir. D. kaki , üç aşamalı S şeklinde bir büyüme eğrisi gösterir ve şeker içeriğinin, özellikle Ekim ayından sonra güneş ışığından önemli ölçüde etkilendiği bildirilmiştir [ 36]. Bu çalışmada, yararlı bileşen içeriği D. kaki'nin büyüme aşamasına bağlı olarak önemli ölçüde farklıydı . Del Bubba vd. [ 37 ], ekili Rojo Brillante ve Kaki Topo'daki çözünür tanik asit içeriğinin Temmuz'dan Kasım'a arttığını, ancak Aralık'ta hızla azaldığını, şeker içeriğinin ise Eylül'den itibaren arttığını buldu. Ek olarak, sıcaklık, aylık yağış, güneşlenme süresi ve günlük aralık gibi çeşitli hava faktörlerinin D. kaki meyve ağırlığını ve kalitesini etkilediği gözlenmiştir [ 17 ]. Analiz edilen dokuz numuneden, olgunlaşmamış büzücü D. kaki'nin saplarıHamyang Gojongsi'den en yüksek tanik asit içeriği (2.597 mg / g) vardı. Myrang Bansi örneklerinden elde edilen tanik asit içeriği, sırasıyla, olgunlaşmamış ve olgun aşamalarda 2.217 mg / g'dan 0.615 mg / g'ye önemli ölçüde azalmıştır. Lee [ 38 ] ayrıca Cheongdo Bansi meyvelerinin fenol içeriklerinin Temmuz ve Ağustos aylarında ve Eylül ve Ekim aylarında hızla azaldığını bildirdi. Bu çalışmada, üç farklı bölgeden büzücü D. kaki saplarının tanik asit içerikleri, olgun aşamada tanik asit içeriğinde önemli farklılıklar göstermiştir. Büzücü D. kaki'nin tanik asit içeriğinin önceki analiziüç farklı bölgeden (Sancheong Gojongsi, Sancheong Danseongsi ve Miryang Bansi), tanik asit içeriğinin kurutulmuş D. kaki'de kurutulmuş olanlara göre % 30 daha yüksek olduğunu gösterdi [ 39 ]. 2015 ve 2016 yıllarında Gyeongsangnam-do eyaletindeki üç çeşitte tanik asit içeriklerindeki değişim benzer eğilimler gösterdi. Büzücü D. kaki'nin kullanımını artırmak için , olgunluğa göre tanik asit içeriğini araştırdık ve büzücü D. kaki hasat etmenin önemli olduğunu belirledik .tamamen olgunlaştıklarında; tanik asidin en düşük olduğu bir zamanda. Bununla birlikte, kapsamlı sonuçlar için çeşitli mevsimlerde daha fazla analiz yapılması gerekir. Çevre koşullarındaki varyasyondan kaynaklanan etkilere ek olarak, D. kaki'nin burukluğu da genetik faktörlere bağlanabilir [ 40 ]. Diospyros kaki'nin meyvesinde büyük miktarda proantosiyanidin biriktirdiği ve bunun da buruk tadı verdiği bilinmektedir [ 41 ]. Proantosiyanidin biyosentez yollarının transkripsiyonel düzenlenmesi, farklı hurma meyveleri çeşitlerindeki değişen burukluk seviyelerine atfedilen birçok faktörden biri olabilir [ 40 , 42]. Proantosiyanidinlerin regülasyonu için birbirleriyle bir protein kompleksi oluşturan Myb transkripsiyon faktörü (DkMYB4) ve bHLH transkripsiyon faktörü (DkMYC1), farklı D. kaki çeşitlerinde proantosiyanidinlerin farklı ekspresyonunda [ 41 ] ve dolayısıyla varyasyonda merkezi bir role sahip olabilir. içlerinde burukluk düzeyinde. Ayrıca, hurmadan elde edilen WD40-tekrar proteininin, meyvelerde proantosiyanidin birikimini düzenlemek için persimmon'da MYB-bHLH-WD40 kompleksleri oluşturmak üzere proantosiyanidin biyosentezi DkMYB2 ve DkMYB4 düzenleyicileri ile etkileşime girdiği gözlenmiştir [ 42 ].

    Sıkılaştırıcı D. kaki'nin sapları Kore'de geleneksel ilaç olarak (Kaki kaliks olarak bilinir) ve yatak ıslatma, kusma ve hıçkırık tedavisinde kullanılmaktadır. Çalışmalar ayrıca D. kaki'nin anti-enflamatuar etkileri olduğunu da göstermiştir . Makrofajlar, çeşitli preinflamatuar aracılar ürettikleri için enflamatuar reaksiyonların gelişimi için kritiktir. NO biyolojik savunma mekanizmalarında önemli bir rol oynar [ 4 ] ancak aşırı NO üretimi, romatoid artrit ve otoimmün bozukluklar gibi inflamatuar hastalıkların gelişmesine neden olur [ 43 ]. Bu nedenle, NO üretimini engellemek, anti-enflamatuar tedaviler için ana hedeftir. Bu nedenle, büzücü saplarından elde edilen ekstrelerin olup olmadığını araştırdık.D. kaki , LPS ile uyarılan iltihaplı bir durumda NO üretimini ve iNOS protein ifadesini bloke etti. Olgunlaşmamış büzücü D. kaki'nin en etkili olduğu ve doza bağlı olarak hareket ettiği bulundu (Şek.​(Şekil 4).4). Şekil 1'de gösterildiği gibi.​Şekil 5,5Olgunlaşmamış büzücü D. kaki'nin saplarından elde edilen özler, doza bağlı bir şekilde iNOS'un protein ekspresyonunu azaltmıştır. Çoğu hücre tipinde NF-B, iltihaplanma ile ilgili önemli bir transkripsiyonel faktördür. NF-κB, pro- ve anti-inflamatuar özelliklere sahip bir dimerik molekül ailesidir. Memelilerde, NF-κB ailesi beş proteinden oluşur: NF-κB1 (p50 / 105), NF-κB2 (p52 / 100), Rel A (p65), Rel B ve c-Rel [ 34 , 44 ]. Bunlardan p65 / p50 heterodimer, en baskın proinflamatuar kompleks ve p65 nükleer translokasyondur ve DNA bağlanması tipik olarak NF-κB yolağının aktivasyonu olarak tanımlanır [ 45]. LPS gibi harici uyaranlarla aktivasyon üzerine, IκB proteini fosforile edilir, bozulur ve çekirdeğe yer değiştirir. Bu nedenle, IκB'nin degradasyonu, NF-κB'nin gen transkripsiyonunu düzenlediği çekirdeğe translokasyonunu serbest hale getirir. NF-κB aktivasyonu, proinflamatuvar mediyatörlerin ve iNOS, COX-2 ve NO gibi sitokinlerin transkripsiyonuna yol açar [ 46]. Sap özlerinin NO üretimini baskıladığını ve transkripsiyonel ve transkripsiyon sonrası seviyelerde iNOS ekspresyonunu düşürdüğünü ve ayrıca LPS ile uyarılan RAW 264.7 hücrelerinde p65 nükleer translokasyonunu azalttığını bulduk. Bu sonuçlar, sap özlerinin, p65 fosforilasyonunu azaltarak NF-KB'nin inaktivasyonu yoluyla iNOS ekspresyonunu inhibe ettiğini gösterir. RAW 264.7 makrofajlarında NF-KB yolağının inhibisyonu, pro-enflamatuar mediyatörleri aşağı regüle etti ve dolayısıyla olgunlaşmamış büzücü D. kaki'nin saplarının anti-enflamatuar etkilerini sergiledi . Sapların yanı sıra, önceki çalışma, D. kaki'nin meyvelerinin, serbest radikalleri süpürme kabiliyeti nedeniyle inflamatuar tepkileri iyileştirme potansiyeline sahip olduğunu da göstermiştir [ 15, 34 ]. Sonuç olarak, olgunlaşmamış büzücü D. kaki'nin saplarının anti-enflamatuar potansiyeli , hastalık durumlarının tedavisinde kullanılmak üzere kullanılabilir.

    Sonuç
    Bu çalışma , Gyeongnam eyaletindeki büzücü D. kaki ( Diospyros kaki Thunb.) Saplarının tanik asit içeriğini ve anti-enflamatuar aktivitelerini , kültür türlerine ve olgunluk aşamalarına göre araştırdı ve etkinliklerine göre optimum hasat süresini önermek için: bitkisel bir ilaç. Analiz edilen tüm numunelerin tanik asit içerdiği bulundu ve evre 1 (8-9 aylık) numuneler, özellikle Gojongsi'den (Hamyang) olanlar olmak üzere en yüksek tanik asit içeriği yüzdesine sahipti. Ayrıca sap ekstraktlarının antienflamatuvar etkileri doğrulanmış ve etkilerinin olgunluğa göre azaldığı görülmüştür. Bu çalışma, büzücü D. kaki'nin tanik asit içeriğinin nasıl olduğuna dair temel bilgiler sağlar.farklı olgunluk düzeylerinde saplar değişir. Bu özütlerin anti-enflamatuar etkilerinin, doğu tıbbının etkinliğinin doğrulanmasında yardımcı olması beklenmektedir. Büzücü D. kaki'nin tıbbi ve tıbbi olmayan kullanımı için optimum hasat sürelerinin 8-9 ay olduğunu öne sürüyoruz , ancak bu bulguların işbirliği için daha fazla araştırma yapılması gerekiyor.

    Teşekkürler
    Bu çalışmada kullanılan D. kaki örneklerini özel olarak tanımlayan Kore, Gyeongsangnam-do'daki Kore Orman Çevre Araştırma Enstitüsü'nden Dr. SM Kang'a özellikle teşekkür ederiz .

    Kısaltmalar
    CCK8 Hücre Sayma Kiti-8
    COX-2 Siklooksijenaz-2
    DNA Deoksiribonükleik asit
    HPLC Yüksek performanslı sıvı kromatografisi
    INOS Uyarılabilir nitrik oksit sentaz
    LPS Lipopolisakkarit
    NF-Κb Nükleer faktör-kappa B
    HAYIR Nitrik oksit
    PCR Polimeraz zincirleme reaksiyonu
    RNA Ribonükleik asit
    TKM Geleneksel Kore tıbbı
    Yazar katkıları
    JC deneyi gerçekleştirdi, MK biyoaktif kimyasal analizi gerçekleştirdi, HJ & RK makaleyi eleştirel bir şekilde revize etti ve YK tüm örnekleri topladı ve çalışma tasarımını ve makalenin tartışma bölümünü yazdı. Tüm yazarlar, makalenin son bilimsel yazısını tartıştı ve üzerinde anlaştı.

    Yazarların bilgileri
    Jieun Choi (MS): Bilim ve teknoloji Üniversitesi, Kore Oryantal Tıp enstitüsü kampüsünde yüksek lisans öğrencisi. Mi Jeong Kim (PhD): Kore Biyobilim ve Biyoteknoloji Araştırma Enstitüsü, İmmünoterapi Araştırma Merkezi'nde doktora sonrası araştırmacı. Richard Komakech: Bilim ve teknoloji Üniversitesi, Kore Doğu Tıbbı enstitüsü kampüsünde doktora öğrencisi ve Uganda, Sağlık Bakanlığı Doğal Kemoterapötik Araştırma Enstitüsü'nde araştırmacı. Haiyoung Jung (PhD): Kore Biyobilim ve Biyoteknoloji Araştırma Enstitüsü, İmmünoterapi Araştırma Merkezi'nde baş araştırmacı. Sorumlu yazar Youngmin Kang (Ph.D): Kore Oryantal Tıp Enstitüsü'nde baş araştırmacı ve Kore Bilim ve Teknoloji Üniversitesi Profesörü.

    Finansman
    Bu çalışma, Kore Bitkisel Tıbbı ile İlişkili Yeni Maya Suşu [KIOM G15050 onaylı ] kullanılarak Anti fungisitin Geliştirilmesi ; Diospyros kaki Calyx [hibe sayısı K17690]; Endüstrinin talebine dayalı olarak Kore Bitkisel Tıbbı İle İlgili Patent Mayası kullanılarak Kozmetik Korumanın Geliştirilmesi [hibe numarası K18720]; Standardize Edilmiş Bitkisel Kaynakların Uygulamalı Geliştirilmesi [hibe numarası KSN1911420]; Kore Oryantal Tıp Enstitüsü'nden (KIOM), Kore Cumhuriyeti Bilim ve BİT Bakanlığı aracılığıyla.

    Veri ve materyallerin mevcudiyeti
    Ham veriler, Kore Oryantal Tıp Enstitüsü'nün Standart Bitkisel Kaynaklar Merkezi'ndeki halka açık bir depoda saklanmıştır ve yazarların makul talebi üzerine kullanılabilir.

    Etik onay ve katılma izni
    Uygulanamaz. Yayın izni
    Uygulanamaz. Çıkar çatışması
    Yazarlar, rakip çıkarları olmadığını beyan ederler.

    Dipnotlar
    Yayıncının Notu
    Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yargı yetkisi iddiaları konusunda tarafsız kalır.

    Katılımcı Bilgileri
    Jieun Choi, E-posta: rk.er.moik@iohcej .
    Mi Jeong Kim, E-posta: rk.er.moik@600otit .
    Richard Komakech, E-posta: rk.er.moik@drahcir .
    Haiyoung Jung, E-posta: rk.er.bbirk@gnuoyiah .
    Youngmin Kang, E-posta: rk.er.moik@gnakmy .

    Referanslar
    1. Arulselvan P, Fard TM, Tan SW, Gothai S, Fakurazi S, Norhaizan EM, Kumar SS. Enflamasyonda antioksidanların ve doğal ürünlerin rolü. Oxidative Med Cell Longev. 2016; 2016 : 5276130. doi: 10.1155 / 2016/5276130. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    2. Huang BP, Lin CH, Chen YC, Kao SH. Perilla frutescens yaprak özütünün lipopolisakkarit ile uyarılan RAW 264. 7 hücreleri üzerindeki anti-enflamatuar etkileri. Mol Med Rep. 2014; 10 (2): 1077–1083. doi: 10.3892 / mmr.2014.2298. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    3. Kim EO, Lee H, Cho CH, Kim YJ, Kim DO. Kurutulmuş hurmaların etil asetat fraksiyonunun (Diospyros kaki thumb.) THP-1 insan akut monositik lösemi hücre hattı üzerindeki antioksidan kapasitesi ve anti-enflamatuar etkisi. J Korean Soc Appl Biol Chem. 2011; 54 (4): 606–611. doi: 10.3839 / jksabc.2011.087. [ CrossRef ] [ Google Akademik ]
    4. Matsuda H, Morikawa T, Ando S, Toguchida I, Yoshikawa M. Nitrik oksit üretimini inhibe edici aktivite ve etki mekanizması için flavonoidlerin yapısal gereksinimleri. Bioorg Med Chem. 2003; 11 (9): 1995–2000. doi: 10.1016 / S0968-0896 (03) 00067-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    5. Yuan G, Wahlqvist ML, He G, Yang M, Li D. Doğal ürünler ve anti-enflamatuar aktivite. Asia Pac J Clin Nutr. 2006; 15 (2): 143–152. [ PubMed ] [ Google Scholar ]
    6. Javadi B, Sahebkar A. Otoimmün miyokardite karşı anti-inflamatuar ve immünomodülatör aktivitelere sahip doğal ürünler. Pharmacol Res. 2017; 124 : 34–42. doi: 10.1016 / j.phrs.2017.07.022. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    7. Azab Abdullatif, Nassar Ahmad, Azab Abed. Doğal Ürünlerin Anti-Enflamatuar Aktivitesi. Moleküller. 2016; 21 (10): 1321. doi: 10.3390 / molecules21101321. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    8. Gosslau A, Li S, Ho CT, Chen KY, Rawson NE. Antiinflamatuar aktivitelerine ilişkin çalışmalarda doğal ürün karakterizasyonunun önemi. Mol Nutr Food Res. 2011; 55 (1): 74–82. doi: 10.1002 / mnfr.201000455. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    9. Boudet AM. Fenolik bileşiklerdeki araştırmanın gelişimi ve güncel durumu. Fitokimya. 2007; 68 (22): 2722–2735. doi: 10.1016 / j.phytochem.2007.06.012. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    10. Minussi RC, Rossi M, Bologna L, Cordi L, Rotilio D, Pastore GM, Durán N. Ticari şarapların fenolik bileşikleri ve toplam antioksidan potansiyeli. Food Chem. 2003; 82 (3): 409–416. doi: 10.1016 / S0308-8146 (02) 00590-3. [ CrossRef ] [ Google Akademik ]
    11. Veberic R, Jurhar J, Mikulic-Petkovsek M, Stampar F, Schmitzer V. 11 hurma meyvesi (Diospyros kaki L.) çeşidinde birincil ve ikincil metabolitlerin karşılaştırmalı çalışması Food Chem. 2010; 119 (2): 477–483. doi: 10.1016 / j.foodchem.2009.06.044. [ CrossRef ] [ Google Akademik ]
    12. Hagerman AE, Riedl KM, Jones GA, Sovik KN, Ritchard NT, Hartzfeld PW, Riechel TL. Biyolojik antioksidanlar olarak yüksek moleküler ağırlıklı bitki polifenolikleri (tanenler). J Agric Food Chem. 1998; 46 (5): 1887–1892. doi: 10.1021 / jf970975b. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    13. Parfitt DE, Yonemori K, Honsho C, Nozaka M, Kanzaki S, Sato A, Yamada M. Asya hurması çeşitleri, buruk ve büzücü olmayan türler arasındaki ilişkiler. Ağaç Genet Genomları. 2015; 11 (2): 1–9. doi: 10.1007 / s11295-015-0848-z. [ CrossRef ] [ Google Akademik ]
    14. Robbins CT, Hanley TA, Hagerman AE, Hjeljord O, Baker DL, Schwartz CC. MautzWW. Bitkileri geviş getirenlere karşı korumada tanenlerin rolü: protein bulunabilirliğinde azalma. Ekoloji. 1987; 68 (1): 98–107. doi: 10.2307 / 1938809. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    15. Butt SM, Sultan TM, Aziz M, Naz A, Ahmed W, Kumar N, Imran M. Persimmons (Diospyros kaki) meyve: gizli fitokimyasallar ve sağlık iddiaları. EXCLI J. 2015; 14 : 542–561. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    16. Hidalgo C, Mateo E, Mas A, Torija MJ. Hurmaların fermentasyonu ve asetifikasyonundan izole edilen maya ve asetik asit bakterilerinin tanımlanması (Diospyros kaki) Gıda Mikrobiyolü. 2012; 30 (1): 98–104. doi: 10.1016 / j.fm.2011.12.017. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    17. Park Y, Kim MJ, Park SB, Oh SI. Hava koşullarının meyve özellikleri ve Sangju, Gyeongsangbuk-do'daki 'Sangjudungsi' hurma çeşidinin verimi üzerindeki etkisi. Meteorol için Korece J Agric. 2015; 17 (4): 340–347. doi: 10.5532 / KJAFM.2015.17.4.340. [ CrossRef ] [ Google Akademik ]
    18. Jeong CH, Kwak JH, Kim JH, Choi GN, Jeong HR, Kim DO, Heo HJ. Olgunlaşma sırasında Daebong-gam'ın (Diospyros kaki) besin bileşenlerindeki değişiklikler. Kore J Gıda Koruyucusu. 2010; 17 (4): 526–532. [ Google Scholar ]
    19. Kang SK, Ahn KH, Choi ST, Do KR, Cho KS. Çevre dostu meyve bahçelerinden gelen hurma (Diospyros kaki'Fuyu ') meyvelerinde dikim yeri ve meyve verme yönünün meyve donu zararına etkisi. KJ Org Agric. 2014; 22 (4): 789–799. doi: 10.11625 / KJOA.2014.22.4.789. [ CrossRef ] [ Google Akademik ]
    20. Park CG, Lee KC, Lee DW, Choo HY, Albert PJ. Saflaştırılmış Hurma tanen ve tanik asidin fasulye böceği Riptortus clavatus'un hayatta kalması ve üremesi üzerindeki etkileri. J Chem Ecol. 2004; 30 (11): 2269–2283. doi: 10.1023 / B: JOEC.0000048788.35693.23. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    21. Arnal L, Rio MA. Hurma meyvelerinde karbondioksit ve nitrojenle zenginleştirilmiş atmosferler ile burukluğun giderilmesi “Rojo brillante” J Food Sci. 2003; 68 (4): 1516–1518. doi: 10.1111 / j.1365-2621.2003.tb09676.x. [ CrossRef ] [ Google Akademik ]
    22. Li PM, Du GR, Ma FW. Sıkılaştırıcı olmayan hurmaya karşı büzücü farklı meyve dokularının fenolik konsantrasyonu ve antioksidan kapasitesi. Sci Hortic. 2011; 129 (4): 710–714. doi: 10.1016 / j.scienta.2011.05.024. [ CrossRef ] [ Google Akademik ]
    23. Igual M, Castelló ML, Ortolá MD, Andrés A. Isıl işlem görmeden ozmotik dehidrasyon ile üretilen hurma reçelinin bazı kalite özellikleri. Int J Gıda Müh. 2011; 7 (5): 1–15. [ Google Scholar ]
    24. Jeong YJ, Lee GD, Kim KS. Tepki yüzeyi metodolojisi kullanılarak hurma sirkesinin fermantasyon durumu için optimizasyon. Korece J Food Sci Technol. 1998; 30 (5): 1203–1208. [ Google Scholar ]
    25. Kim JK, Kang WW, Oh SL, Kim JH, Han JH, Moon HK, aChoi JU. Çeşitli bölgelerden gelen geleneksel kuru hurmaların kalite özelliklerinin karşılaştırılması. J Korean Soc Food Sci Nutr. 2004; 33 (1): 140–145. doi: 10.3746 / jkfn.2004.33.1.140. [ CrossRef ] [ Google Akademik ]
    26. Oh HM, Kim MK. Kuru yaprak tozu, hurma ve yeşil çay yapraklarının su ve etanol ekstraktlarının 12 aylık sıçanlarda lipit metabolizması ve antioksidatif kapasite üzerine etkileri. Korece J Nutr. 2001; 34 : 285–298. [ Google Scholar ]
    27. Kawase M, Motohashi N, Satoh K, Sakagami H, Nakashima H, Tani S, Molnár J. Hurma (Diospyros kaki) soyma ekstraktlarının biyolojik aktivitesi. Phytother Res. 2003; 17 (5): 495–500. doi: 10.1002 / ptr.1183. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    28. Chen XN, Fan JF, Yue X, Wu XR, Li LT. Hurmada radikal süpürme aktivitesi ve fenolik bileşikler (Diospyros kaki L. cv. Mopan) J Food Sci. 2008; 73 (1): 24–28. doi: 10.1111 / j.1750-3841.2007.00587.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    29. Young AL, Cho EJ, Tanaka T, aYokozawa T. Hurma kaynaklı proantosiyanidinlerin oksidatif strese ve diyabete bağlı sindirim enzimlerine karşı inhibe edici aktiviteleri. J Nutr Sci Vitaminol. 2007; 53 (3): 287-292. doi: 10.3177 / jnsv.53.287. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    30. Jeong SI, Cho JK, Mok JY, Kim SJ, Park JM, Jeon IH, Jang S. I. Hurma yapraklarının büyüme sırasında antioksidan aktivitesi. Korece J Farmakognozi. 2010; 41 (4): 255-63.
    31. Zhang H, Zheng X, Su D. Mikrodalga muamelesi ve Cryptococcus laurentii ile armutun mavi küf çürümesinin hasat sonrası kontrolü . J Gıda Müh. 2006; 77 (3): 539–544. doi: 10.1016 / j.jfoodeng.2005.06.066. [ CrossRef ] [ Google Akademik ]
    32. Kore Tıp Okulları Herbology Yayın Kurulu. Herbology [Boncho-hak] Seoul: Young-Lim Press; 2004. [ Google Scholar ]
    33. Çin Farmakopesi Komisyonu. Çin Halk Cumhuriyeti'nin Farmakopesi hacmi Ι. Pekin: Çin Tıbbi Eczacılık Bilimi ve Teknolojisi Yayınevi; 2010. [ Google Scholar ]
    34. Choi J. Gyeongnam eyaletindeki kültivar türleri ve olgunluk aşamalarına göre büzücü hurmaların (Diospyros kaki Thunb) saplarının mikrobiyal tanımlama, tanik asit içerikleri ve anti-enflamatuar aktiviteleri. Yüksek lisans tezi. Teknoloji ve Bilim Üniversitesi; 2017.
    35. Chang F, Lu C. Hiccup: gizem, doğa ve tedavi. J Neurogastroenterol Motil. 2012; 18 (2): 123–130. doi: 10.5056 / jnm.2012.18.2.123. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
    36. Sugiura A, Zheng GH, Yonemori K. Büyüme aşaması III sırasında kontrollü sıcaklıklarda hurma meyvesinin büyümesi ve olgunlaşması. HortScience. 1991; 26 (5): 574–576. doi: 10.21273 / HORTSCI.26.5.574. [ CrossRef ] [ Google Akademik ]
    37. Del Bubba M, Giordani E, Pippucci L, Cincinelli A, Checchini L, Galvan P. Ağaç üzerinde büyüme ve olgunlaşma sırasında ve farklı hasat sonrası muamelelere yanıt olarak buruk hurmalarda tanenlerde, askorbik asit ve şeker içeriğindeki değişiklikler. J Gıda Besteleri Anal. 2009; 22 (7): 668–677. doi: 10.1016 / j.jfca.2009.02.015. [ CrossRef ] [ Google Akademik ]
    38. Lee YR, Chung HS, Moon KD. Cheongdobansi'nin polifenol içeriğindeki değişiklik, gelişme sırasında meyveyi hurmaya çevirir. Kore J Gıda Koruyucusu. 2011; 18 (1): 13–17. doi: 10.11002 / kjfp.2011.18.1.013. [ CrossRef ] [ Google Akademik ]
    39. Choi JE, Lee GY, Moon BC, Kang MS, Kim YJ, Kang MY. Kore'nin Geongnam eyaletinde geleneksel Kore tıbbı (kaki Calxy) olarak büzücü hurmalardan ( Dispyros kaki Thunb.) Tanik asit içeriklerinin analizi . Kor Herb Med Inform. 2016; 4 (1): 35–42. [ Google Scholar ]
    40. Nishiyama S, Onoue N, Kono A, Yonemori K, vd. Hortic J. 2018; 87 (3). 10.2503 / hortj.OKD-140.
    41. Nishiyama Soichiro, Onoue Noriyuki, Kono Atsushi, Sato Akihiko, Yonemori Keizo, Tao Ryutaro. Trabzon hurması meyvesindeki burukluk kaybının altında yatan bir gen düzenleyici ağın karakterizasyonu. Planta. 2017; 247 (3): 733–743. doi: 10.1007 / s00425-017-2819-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    42. Naval M, Muñoz GF, Lloret A, Besada C, Salvador A, Badenes LM, Rios G. Trabzon hurmasından elde edilen bir WD40-tekrar proteini, proantosiyanidin biyosentezi DkMYB2 ve DkMYB4 düzenleyicileri ile etkileşime girer. Ağaç Genet Genomları. 2016; 12 (1). 10.1007 / s11295-016-0969-z.
    43. Yoon SB, Lee YJ, Park SK, Kim HC, Bae H, Kim HM, Park W. Scutellaria baicalensis su özütünün LPS ile aktive edilmiş RAW 264.7 makrofajları üzerindeki anti-enflamatuar etkileri. J Ethnopharmacol. 2009; 125 (2): 286–290. doi: 10.1016 / j.jep.2009.06.027. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    44. Verma IM, Stevenson JK, Schwarz EM, Van Antwerp D, Miyamoto S. Rel / NF-kappa B / I kappa B ailesi: samimi birliktelik ve ayrışma öyküleri. Genes Dev. 1995; 9 (22): 2723–2735. doi: 10.1101 / gad.9.22.2723. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    45. Paul FG, Michael HP, Mukundan A, Nada M. Enflamasyonun çözünürlüğü: prostaglandin E2, uyarılmış romatoid sinovyal fibroblastlarda bireysel NF-kappaB alt birimlerinin (P65, P50) nükleer trafiğini ayırır. J Immunol. 2005; 175 (10): 6924–6930. doi: 10.4049 / jimmunol.175.10.6924. [ PubMed ] [ CrossRef ] [ Google Scholar ]
    46. Kim Kyoung-Su, Lee Dong-Sung, Kim Dong-Cheol, Yoon Chi-Su, Ko Wonmin, Oh Hyuncheol, Kim Youn-Chul. Lipopolisakkaritle Uyarılmış RAW 264.7 Makrofajlarda Diospyros kaki'den İzole Edilen Koussarik ve Betulinik Asitlerin Anti-Enflamatuar Etkileri ve Etki Mekanizmaları. Moleküller. 2016; 21 (9): 1206. doi: 10.3390 / molecules21091206. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

    Anti aging etkili meyve

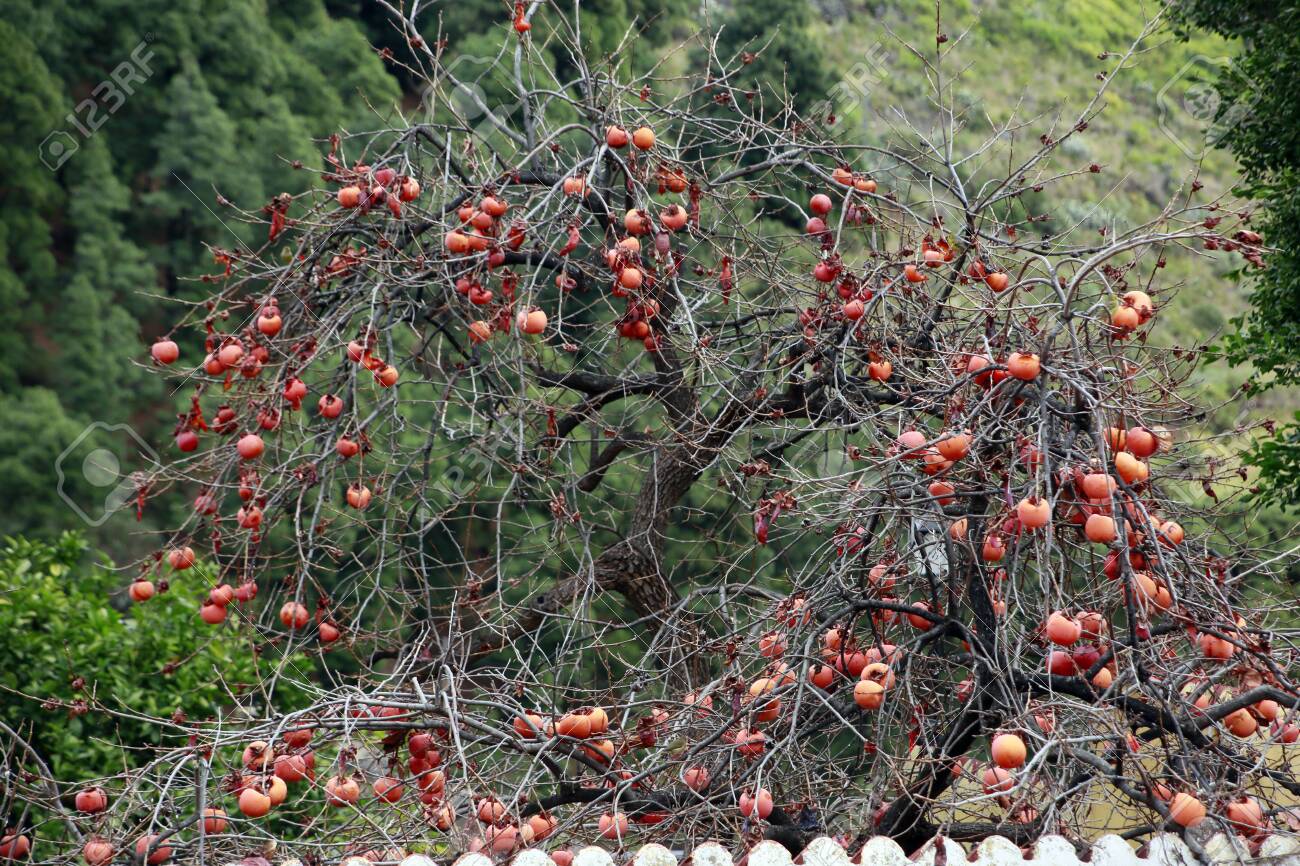
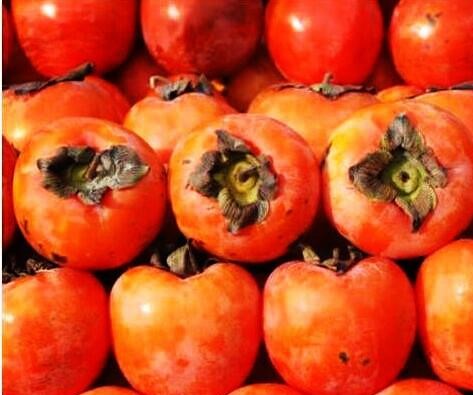
    Görüntü olarak domatesi andıran, olgunlaşınca lezzeti artan ve sayısız faydası olan bir meyve Trabzon hurması diğer adıyla cennet meyvesi. Tropikal bir meyve olarak uzak doğudan ülkemize getirilmiş ve karadeniz ikliminin uygun olmasıyla üretimi artmış.


    Peki severek tükettiğimiz bu meyvenin faydalarını biliyor muyuz?


    Yüksek oranda antioksidan ve fitokimyasal maddeler içerir. Bu nedenle vücudumuzda oluşan serbest radikallerin etkisini hatta serbest radikal oluşumunu dahi azaltır. Serbest radikaller ilerleyen yaşla birlikte hastalıkların oluşumunu tetikler, kanser riskini artırır, görme fonksiyonlarını olumsuz etkiler.


    Lif içeriği oldukça zengindir. Ara öğün olarak tüketildiğinde tokluk hissini artırır, sindirim sistemini düzenler, kabızlık sorunu yaşayanlarda faydalıdır.


    Toksik maddelerin atımını sağlar, vücudun süpürgesidir adeta.


    Göz sağlığını koruyucu multi vitamin etkisi vardır. İçeriğinde A vitamini, K vitamini, C vitamini, zeakzantin, lutein bulunur ve gözde katarakt oluşumundan makula dejenerasyonuna kadar korucu etkisi bulunmaktadır.


    İçeriğinde yüksek oranda bulunan fito kimyasallar kansere karşı koruyu bir besin olma özelliğini artırıyor. Trabzon hurması bağışıklık sistemini güçlendirip dna hasarını da önleyerek kanser hücrelerinin artmasını önleyebilmekte. Özellikle meme kanserinden koruyan fisetin adlı maddeyi içeren ender besinlerdendir.


    Serbest radikal oluşumu malesef cilt sağlığını da olumsuz etkilemekte. Cilt elastikiyetini kaybedip, kırışıklıklar ve lekelenme de görülmekte. Sağlıklı bir beslenme programı içerisinde Trabzon hurmasının yaşlanmaya karşı hücre yenileyici anti aging özelliği bulunmakta.Diyetisyen Özlem Sert Aydın


    Faydalarının yanı sıra fazla tüketildiğinde ishal yapıcı, tansiyon düşürücü ve şekeri yükseltici etkileri de bulunmakta. Uygun miktarda ve ara öğün olarak tüketmek en sağlıklısı.


    Kaynak: Milliyet.com.tr
    Bitkisel Ürünler
    Gökçek Şifa
    Şifalı Bitkiler

  • #2
    Trabzon hurması (Diospyros kaki) meyvesi: gizli fitokimyasallar ve sağlıkla ilgili iddialar

    Masood Sadiq Butt , 1 M.Tauseef Sultan , 2 Mahwish Aziz , 1 Ambreen Naz , *, 3 Waqas Ahmed , 1 Naresh Kumar , 4 ve Muhammad Imran 5
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
    Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır .
    Şuraya gidin: Öz

    Şu anda, beslenme ve sağlık bağlantıları, kardiyovasküler bozukluklar, oksidatif stres, diabetes mellitus, vb. Dahil olmak üzere çeşitli fizyolojik tehditlerle mücadele etmek için ortaya çıkan diyet tabanlı rejim stratejisine odaklanmıştır. Bu bağlamda, meyve ve sebze tüketimi, insan sağlığını korumak için koruma olarak büyük önem kazanmaktadır. . Aynı şekilde, fitokimyasalları ve biyoaktif molekülleri de çeşitli rahatsızlıklara karşı ümit verici olarak popüler hale geliyor. Mevcut inceleme, fitokimyası ve ilgili sağlık iddialarına özel referansla hurma meyvesi ile ilgili bilgileri özetleme çabasıdır. Buna göre, proantosiyanidin, karotenoidler, tanenler, fl avonoidler, antosiyanidin, kateşin gibi bazı biyoaktif moleküllerinin rolü vurgulanmaktadır. Zengin bitki kimyası sayesinde, Trabzon hurması ve ürünlerinin, reaktif oksijen türlerinin (ROS) neden olduğu oksidatif hasarı azaltmada etkili olduğu düşünülmektedir. Antioksidan potansiyeli, hurma fonksiyonel bileşenlerinin anti-malign ve anti-melanojenik perspektiflerinden fazlasıyla sorumludur. Ek olarak, kardiyovasküler bozukluklar ve diabetes mellitus gibi yatıştırıcı yaşam tarzı ile ilgili eşitsizliklerde etkilidirler. Trabzon hurmasının farmakolojik uygulamasının veya proantosiyanidin gibi fonksiyonel bileşenlerinin hiperlipidemi ve hiperglisemiye karşı yardımcı olabileceği kanıtlanmış gerçekler vardır. Bununla birlikte, büzücü tat ve diospirobezoar oluşumu, canlılığını desteklemek için lakuna yaratmaktadır. Genel olarak, hurma ve bileşenleri diyet temelli tedavide etkili modüllerden biri olma potansiyeline sahiptir; ancak,

    Anahtar kelimeler: Trabzon hurması, fitokimyasallar, burukluk, tanenler, kardiyovasküler bozukluklar, oksidatif stres, diabetes mellitus
    Şuraya gidin: Giriş

    Meyve ve sebzeler insan beslenmesinin önemli bir bileşenidir ve insan sağlığının korunmasında önemli rol oynarlar. Tüketimlerine bağlı sağlığı geliştirici potansiyeller, esas olarak biyoaktif bileşenlerin varlığından kaynaklanmaktadır ve bu fitokimyasallar, insan fizyolojisindeki yararlı rolleri nedeniyle yaygın olarak kabul edilen farklı biyoaktif moleküllerdir (Manach ve diğerleri, 2004 [ 83 ]). Bitki sayısı, sağlıklı gıda varlıkları olarak popülerlik kazandı, ancak yine de birçok ufuk, araştırmacıların ilgisini gerektiriyor. Bunların arasında, Trabzon hurması ( Diospyros kaki L.), güçlü antioksidan aktiviteye sahip olan bu besleyici meyvelerden biridir (Jung ve diğerleri, 2005 [ 59 ]; Igual ve diğerleri, 2008 [ 50 ]).

    Trabzon hurması, Ebenaceae familyasına ait etli lifli tropikal, yaprak döken bir meyvedir . Genellikle Çin, Kore, Japonya, Brezilya, Türkiye ve İtalya dahil dünyanın sıcak bölgelerinde yetiştirilmektedir (Itamura ve diğerleri, 2005 [ 54 ]; Yokozawa ve diğerleri, 2007 [ 128 ]). 2007 yılında, küresel hurma üretimi,% 70.0 Çin,% 10.0 Kore ve% 7.0 Japonya'dan olmak üzere 3.3 milyon tonun üzerine çıktı. Trabzon hurması, Avrupa toplumlarında çok popüler değildir, ancak tüketicinin gizli sağlığı geliştirme potansiyeline ilişkin farkındalığı nedeniyle talebi artmaktadır. Akdeniz bölgesi, 110.000 tona ulaşan Trabzon hurması üretimi için de uygundur (Jung ve diğerleri, 2005 [ 59 ]; Luo, 2007 [ 82 ]; Bubba ve diğerleri, 2009 [18 ]).

    Genel olarak, dünya çapında 400'den fazla hurma türü ekilir. Bunlar arasında Diospyros kaki, Diospyros virginiana, Diospyros oleifera ve Diospyros lotus (Bibi ve diğerleri, 2007 [ 16 ]) önemli bir öneme sahiptir. Okurlar için, D. kaki'nin (Japon hurması) en umut verici tür olması ilginçtir (Rahman ve diğerleri, 2002 [ 105 ]; Zheng ve diğerleri, 2006 [ 133 ]). Japonya'da yetiştirilen popüler çeşitler ve ilgili özellikleri Tablo 1'de tartışılmıştır.(Tablo 1)(Tablo 1'deki referans: Suzuki ve diğerleri, 2005 [ 118 ]).

    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-t-001.jpg'dir.
    tablo 1
    Ticari olarak tanınan çeşitlerin özellikleri (Nezaket: Suzuki ve diğerleri, 2005)
    Bazı Asya kültürlerinde, tüketiciler hurma ve onun fonksiyonel bileşenlerine ilişkin sağlık iddialarının farkındadır. Trabzon hurmasının zengin bitki kimyası, çeşitli rahatsızlıkları tedavi etmek için diyet temelli rejimde yeni araştırma yolları açtı. Trabzon hurmasının sağlığı geliştirme potansiyeli, serbest radikal üretimi, hiperkolesterolemi, diabetes mellitus, kanser, deri bozuklukları, hipertansiyon vb. Karşı etkililiğini içerir. Bu inceleme, Trabzon hurmasının fitokimyasını ve biyoaktif moleküllerinin çeşitli sağlığı iyileştirmedeki önemini açıklamaya yönelik bir girişimdir. eşitsizlikler.

    Şuraya gidin: Botanik Tarih ve Kompozisyon

    İklimsel olarak hurma olgunlaşması etilen tarafından düzenlenir. İklimsel evrede, jöle benzeri etle sonuçlanan hızlı yumuşama meydana gelir, böylece hurma birkaç gün içinde pazarlanamaz hale gelir. Diğer climacterics farklı olarak, ticari olgunlukta hasat edilen hurma, daha az etilen üretimini sağlar (1.0 altında nl g -1 h -1 bile yoğun üretimi), bu hasat daha erken evre serbest bırakır olgun etilen yani daha yüksek miktarlarda üzerinde 50 nl gr -1 h -1 (Nakano ve diğerleri, 2002 [ 95 ]; Harima ve diğerleri, 2003 [ 46]). Azami şeker ve arzu edilen portakal renginin varlığı nedeniyle Trabzon hurmasının yeme kalitesi, iklim öncesi aşamanın sonunda en iyi kabul edilir. Daha fazla bilgi için, meyve renginin etilen kaynaklı solunumun başlamasından hemen önce geliştiği (Zheng ve diğerleri, 2005 [ 134 ]; Igual ve diğerleri, 2008 [ 50 ]; Arnal ve diğerleri, 2008 [ 7 ]) . Trabzon hurması meyvelerinin botanik sınıflandırması Tablo 2'de açıklanmıştır.(Tablo 2).
    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-t-002.jpg'dir.
    Ayrı bir pencerede aç
    Tablo 2
    Botanik sınıflandırma
    Burukluğun derecesine göre hurma, büzücü (Yamada ve diğerleri, 2002 [ 127 ]; Luo, 2007 [ 82 ]) ve büzücü olmayan türler (Asgar ve diğerleri, 2003 [ 8 ]; Harima ve diğerleri ) olarak ikiye ayrılır. ., 2003 [ 46 ]; Suzuki ve diğerleri, 2005 [ 118 ]). Ticari olarak popüler çeşitlerin özellikleri Tablo 1'de zaten açıklanmıştır.(Tablo 1)(Tablo 1'deki referans: Suzuki ve diğerleri, 2005 [ 118 ]). Trabzon hurması, % 80,3 su,% 0,58 protein,% 0,19 toplam lipit,% 18,6 toplam karbonhidrat ve bazı mineraller (magnezyum, demir, çinko, bakır, manganez vb .) İçeren beslenmesinde öne çıkmaktadır (Achiwa ve diğerleri, 1997 [ 1 ]). .) ve sırasıyla 1.48 g ve 7.5 mg'a kadar toplam diyet lifi ve askorbik asit (Özen ve diğerleri, 2004 [ 98 ]; Ercişli ve diğerleri, 2007 [ 31 ]). Bazı araştırma çalışmaları, hurmanın kalsiyum ve potasyum mevcudiyetine de katkıda bulunduğunu göstermiştir. Şeker içeriği (12,5 g / 100 g), elma, şeftali, armut ve portakal gibi diğer yoğun tüketilen meyvelere göre hurmada daha yüksektir (Piretti, 1991 [ 102]). Şekerler arasında sükroz ve monomerleri (glikoz ve fruktoz) bol miktarda bulunur (Zheng ve Sugiura, 1990 [ 132 ]; Ittah, 1993 [ 55 ]). Hurma meyvelerinin (çiğ ve kurutulmuş) besin bileşimi Tablo 3'te açıklanmıştır.(Tablo 3).
    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-t-003.jpg'dir.
    Tablo 3
    Hurmanın besin değeri (100 gramlık değer)
    Şuraya gidin: Fitokimyasallar Profili

    Fitokimyasalların alımı meyve, sebze, çay vb. Tüketimine bağlıdır (Xing ve diğerleri, 2001 [ 126 ]; Miller ve Snyder, 2012 [ 92 ]). Bu gıda ürünleri, antioksidanların, yani polifenol, karotenoidler, tokoferollerin varlığı nedeniyle çeşitli fizyolojik tehditlere karşı koruma sağlar (Sakanaka ve diğerleri, 2005 [ 113 ]). Bununla birlikte, besin zincirinde potansiyel besinsel olarak aktif bileşenler olarak kullanımlarını savunmak için bilimsel mantığın oluşturulması önemlidir (Dillard ve German, 2000 [ 29 ]). Trabzon hurmasında bulunan fitokimyasallar ve bunların önemi burada açıklanmaktadır.

    Trabzon hurması yapraklarında ve meyvelerinde, proantosiyanidinler (Jung ve diğerleri, 2005 [ 59 ]; Suzuki ve diğerleri, 2005 [ 118 ]), fl avonoid oligomerler, tanenler, fenolik asitler ve kateşin vb. Gibi bazı özel bileşenler yaygındır. ., 2012 [ 76 ]; Jo ve diğerleri, 2003 [ 57 ]). Karotenoidler ve tanenler (Homnava ve diğerleri, 1990 [ 49 ]; Yokozawa ve diğerleri, 2007 [ 128 ]) önemli fraksiyonlardır (Şekil 1(Şekil 1); Şekil 1'deki referans: Lee ve diğerleri, 2012 [ 76 ]). Bununla birlikte, kuru hurma kalıntısı 0.16-0.25 g / 100 g polifenoller, 0.002 g / 100 g karotenoidler ve 0.64-1.3 g / 100 g proteinlerden oluşur (Jung ve diğerleri, 2005 [ 59 ]). Daha önce, Gorinstein ve ark. (2001 [ 40 ]) hurmanın başlıca fenolik içeriğini, yani epikateşin, ferulik asit, gallik asit, protokatekuik asit, vanillik asit ve p-kumarik asit incelemiştir. Kurutulmuş hurma yapraklarının faydalı etkisi, fenolik bileşiklerin (1.15 g / 100 g) ve lif (63.48 g / 100 g) içeriklerinin varlığından kaynaklanıyor olabilir (Lee ve diğerleri, 2006 [ 77 ]).
    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-g-001.jpg'dir.
    Şekil 1
    Fenolik asitlerin (1 ~ 9) ve kateşinin (10 ~ 16) kimyasal yapıları. 1: gallik asit, 2: protokatekuik asit, 3: tanik asit, 4: p- hidroksilbenzoik asit, 5: vanillik asit, 6: klorojenik asit, 7: kafeik asit, 8: p -kumarik asit, 9: ferulik asit, 10 : epigallokateşin, 11: kateşin, 12: epikateşin, 13: epigallokatekin gallat, 14: gallokateşin gallat, 15: epikateşin gallat, 16: kateşin gallat (Nezaket: Lee ve diğerleri, 2012) Taze ve işlenmiş hurma meyvesinin kimyasal analizinin karşılaştırılması

    Taze ve kurutulmuş hurmalar, enerji kaynağı olarak glikoz ve fruktoz olarak yüksek şeker içeriğine sahip önemli bir besin ürünüdür. Taze ve kurutulmuş hurmaların kalitesinin belirlenmesi için önemli parametreler sırasıyla toplam kuru madde içeriği ve nem içeriğidir. Dehidrasyon sürecinde toplam katıların önemi olduğunu belirtmekte fayda var. Kuru maddenin çoğu, hurma meyvelerinde en çok temsil edildiği gibi basit şekerlere, glikoza ve fruktoza gider. Fennema'ya göre (1977 [ 32]), askorbik asit, gıdaların işlenmesi ve depolanması sırasında besin kalitesi indeksi olarak kabul edilir ve bu nedenle taze, dondurulmuş-taze ve önceden işlenmiş kurutulmuş hurma yapraklarının tüm varyantlarında C vitamini içeriğini inceledik. Taze hurma meyvesindeki C vitamini içeriği kuru ağırlık bazında 85.63 - 102.47 mg / 100 gr veya 460.872 - 541.24 mg / 100 gr aralığındaydı. Taze dondurulmuş hurma meyvesinde C vitamini içeriği kuru ağırlık bazında 103.78 - 112.68 mg / 100 gr veya 509.225 - 545.137 mg / 100 gr aralığındaydı. Genel olarak, hurma meyvesi iyi bir askorbik asit (C vitamini) kaynağıdır ve ayrıca karoten (pro-vitamin A) şeker, ham lif ve mineraller, özellikle potasyum için.2 S 2 O 5 burada sonuçlar sırasıyla% 9.93 - 10.28 ve% 8.61 - 8.91 aralığındadır.

    Hurma Meyvesindeki başlıca fitokimyasal türleri
    Karotenoidler

    Karotenoidler, meyvelerde bol miktarda bulunan pigmentli bileşiklerdir ve sebzeler sarı, turuncu ve kırmızı renktedir. Genellikle belirli biyolojik aktivitelere sahip α, β ve γ formları olarak bulunurlar. Trabzon hurması, karotenoidler, özellikle β-kriptoksantine dönüştürülebilen β-karotenler bakımından zengindir. Bu bileşenlerin ikisi de önemli biyolojik aktivitelere sahiptir (Sarkar ve diğerleri, 1995 [ 114 ]; Kumazawa ve diğerleri, 2002 [ 72 ]). Çeşitli bilim adamları (Sakanaka ve diğerleri, 2005 [ 113 ]; Veberic ve diğerleri, 2010 [ 120 ]) hurma meyvesinde β-karotenlerin baskın olduğunu, ardından β-kriptoksantin ve α-karotenlerin geldiğini bildirdiler.

    Tanenler
    Tanninler, biyolojik olarak aktif moleküllerin önemli kategorilerden biri hurma et içinde mevcut olan (Ahn ve arkadaşları, 2002 [. 2 , molekül ağırlığı kadar olan 1.12 x 10]) 4 dekar (Bae ve arkadaşları, 2000 [. 10 ]; Wu ve Hwang , 2002 [ 124 ]; Jo ve diğerleri, 2003 [ 57 ]). Glikoz ile bağlantılı gallik asit kalıntıları içerirler.glikosidik bağlar. Kimyasal özellikler göz önüne alındığında, tanenler hidrolize edilebilir ve hidrolize edilemez olmak üzere iki geniş gruba ayrılabilir. Bununla birlikte, yapısal konfigürasyonlar temelinde, üç ana kategori vardır, yani kompleks, yoğunlaştırılmış ve hidrolize edilebilir tanenler. Büzülme ile ilgili olarak, tükrük protein komplekslerinin oluşumuna bağlı olarak belirli çeşitlerde yoğunlaştırılmış çözünür tanenlerin yaklaşık% 2'si gözlenmektedir (Manach ve diğerleri, 2004 [ 83 ]; Bibi ve diğerleri, 2007 [ 16 ]; Yokozawa ve diğerleri, 2007 [ 128 ]; Gu ve diğerleri, 2008 [ 43 ]). Büzücü bir hurma yemenin ardından, meyvede bulunan tanen hücreleri ezilir ve çözünür tanenler salınır, böylece büzücü bir his oluşur (Asgar ve ark., 2003 [ 8]). Bununla birlikte, bu hedonik lakuna, protein ile kontrollü reaksiyon yoluyla maskelenebilir. Çözünür tanenlerin çözünmez forma dönüştürülmesi, burukluğun ortadan kalkmasıyla sonuçlanır (Igual ve diğerleri, 2008 [ 50 ]). Ek olarak, flavano-ellagitannin (karbon-karbon bağlantısı yoluyla hidrolize edilebilir tanen kısmı ile birleştirilmiş flavan-3-ol molekülü) ve prosiyanidino-ellagitannin (proantosiyanidinler ve ellagitanninler) da persimmon'da bulunan önemli fitokimyasal kısımlardır. Daha önce, bazı bilim adamları bozulmuş tanen ürünlerini belirlemeye çalıştılar. Bu amaçla, hurma tanenleri K 2 HPO 4 ile kaplanmıştır.ve reaksiyonlar benzil merkaptan kullanılarak başlatıldı. Elde ettikleri sonuçlar dört önemli bileşenin, yani gallo-kateşin, kateşin, kateşin-gallat ve gallokateşin-gallat olduğunu gösterdi. Bu bileşenlerin yapıları Şekil 2'de gösterilmektedir.(İncir. 2)(Şekil 2'deki referanslar: Matsuo ve Itoo, 1978 [ 89 ]; Özen ve diğerleri, 2004 [ 98 ]; Gu ve diğerleri, 2008 [ 43 ]).


    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-g-002.jpg'dir.
    şekil 2
    Trabzon hurması tanen ve ilgili kateşinin kimyasal yapıları
    (Nezaket: Matsuo ve Itoo, 1978; Ozen ve diğerleri, 2004; Gu ve diğerleri, 2008) Fenolik bileşikler
    Hurmada bulunan fenolikler ayrıca suda çözünür / ekstrakte edilebilir [EPP] ve suda çözünmez / ekstrakte edilemez [NEPP] olarak kategorize edilir. EPP'ler doğrudan sindirim sisteminden emildiğinden, bu kategorilerin her ikisinin de emilim modelleri birbirinden farklıdır. Aksine, NEPP'ler bağırsakta emilmez ve dışkıda boşa harcanır (Barry ve diğerleri, 1986 [ 12 ]; Bravo ve diğerleri, 1992 [ 17 ]). Taze hurmada toplam polifenollerin 1.45 mg / 100 g, gallik asit içeriği ise 190.2-252.2 µg / 100 g olarak gözlenmiştir (Sakanaka ve diğerleri, 2005 [ 113 ]). Son zamanlarda taze yapraklarda baskın olan polifenollerin suda çözünür olduğu ve içeriklerin haziran ayında maksimuma (% 2,40 w / w) ulaştığı, daha sonra giderek azaldığı gözlemlenmiştir (Kawakami ve ark., 2010 [62 ]). Fenollerin flavonoid alt sınıfı, küçük flavonoidler (flavanonlar ve dihidroflavonoller), proantosiyanidinler, flavonlar ve flavonolleri içerir. Bu flavonoidlerin bazıları proantosiyanidinler ve flavanoller gibi hurmada mevcuttur (Yokozawa ve diğerleri, 2007 [ 128 ]). Ayrıca, antosiyanidinler, pelargonidin, siyanidin, paeonidin, delfinidin, glukopiranositler, petunidin ve malvidin dahil olmak üzere genellikle suda çözünen antosiyaninlerin pigmentli aglikonlarıdır (Gondo ve diğerleri, 1999 [ 37 ]; Ikegami ve diğerleri, 2009 [ 51 ]; Dembitsky et al. al., 2011 [ 26 ]). Benzer şekilde, yeni bir fenolik metabolit, 4, 8-dihidroksi-6-metil-1-naftalenil 6-O-β-D ksilopiranosil- β-D glukopiranosid (Şekil 3(Şekil 3)) ayrıca hurmadan da çıkarılmıştır (Gondo ve diğerleri, 1999 [ 37 ]).


    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-g-003.jpg'dir.

    Ayrı bir pencerede aç
    Figür 3
    Yeni fenolik bileşik 4,8-dihidroksi-6-metil-1-naftalenil 6-O-β-D ksilopiranosil-β-D glukopiranosit Diospyros kaki'den izole edildi. (Nezaket: Gondo ve diğerleri, 1999) Proantosiyanidinler (PA'lar)
    Bu bileşenler, erken gelişme aşamalarında hurma meyvesinde büyük miktarda birikir. Çevresel stres dahil çeşitli sorunlara karşı koruma sağlayan ikincil metabolitlerdir (Akagi ve diğerleri, 2010 [ 3 ]). Biyokimyasal olarak, avan 3-ol birimlerinin yoğunlaşmasından sonra oluşan renksiz polimerlerdir (Plumb ve diğerleri, 1998 [ 103 ]; Yokozawa ve diğerleri, 2007 [ 128 ]) (Dixon ve diğerleri, 2005 [ 30 ]). Ikegami vd. (2009 [ 51 ]), fenilpropanoid metabolizmasının katalitik ve düzenleyici mekanizmalarını tanımladı ve genellikle Xavan-3-ol birimlerinden oluşan PA'ların, aynı zamanda xavonoller ve glikosile edilmiş antosiyanidinler gibi biyoaktif kısımları da içeren oluştuğunu detaylandırdı (Şekil 4(Şekil 4); Şekil 4'teki referans: Ikegami ve diğerleri, 2009 [ 51 ]). Bunlar 1.38 x 10 molekül ağırlığına sahip kateşin çok birime iki oluşan 4 Da (Ikegami ve ark., 2007 [ 52 ]). PA'lar, büzücü (A) tipi meyvelerde tam olgunluğa ulaştıktan sonra bile daha yüksek miktarlarda bulunur. Karşılaştırıldığında, büzücü olmayan (NA) -tip meyveler, bu fonksiyonel bileşenleri olgunlaşmadan önce kaybeder (Ikegami ve diğerleri, 2009 [ 51 ]). Son yıllarda, ilişkili sağlık iddiaları nedeniyle KA'lara ve monomerlerine daha fazla ilgi gösterildi. Aynı zamanda acı ağız hissi ve rengi sağlamada ve tabii ki tüketim üzerinde de etkilidirler (Lee ve diğerleri, 2008 [ 79 ]; Zhao ve diğerleri, 2007 [ 131 ]).


    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-g-004.jpg'dir.
    Şekil 4
    Bu çalışma ile ilgili Xavonoid aglikonlarının kimyasal yapıları. Flavan-3-ols, proantosiyanidinlerin (PA) monomerleridir, oysa antosiyanidinler, A, B ve C halkalarında çeşitli hidroksil gruplarına bağlı şeker parçalarını içeren antosiyanin aglikonlarıdır (Nezaket: Ikegami ve diğerleri, 2009) Kateşinler
    Bunlar, çeşitli rahatsızlıklara karşı koruma sağlayan biyoaktif moleküller grubuna aittir (Suzuki ve diğerleri, 2005 [ 118 ]). Çoğunlukla üzüm, muz, çilek, kakao ve yeşil çayda bulunurlar (Khokhar ve Magnusdotir, 2002 [ 65 ]). Trabzon hurmasında, çözünür tanenler kateşin (Yokozawa ve diğerleri, 2007 [ 128 ]), kateşin-3-gallat, galokateşin ve galokatekin-3-gallattan (Akyidiz ve diğerleri, 2004 [ 5 ]) oluşur. Ayrıca epikateşin gallat ve epigallokateşin gallat gibi önemli miktarlarda gallik asit esterleri içerirler (Wu ve Hwang, 2002 [ 124 ]; Suzuki ve diğerleri, 2005 [ 118 ]; Gu ve diğerleri, 2008 [ 43]). Büzücü hurmalarda kateşin içerikleri, büzücü olmayan çeşitlere göre daha yüksektir (Suzuki ve diğerleri, 2005 [ 118 ]).

    Oleanolik asit (OA) ve ursolik asit (UA), sırasıyla izlerden 88.57'ye ve izlere ve 27.64 µg / g FW'ye kadar değişen hurmanın önemli biyoaktif bileşenleridir (Zhou ve diğerleri, 2010 [ 135 ]). Ayrıca, diyet lifi yaklaşık% 1.20-1.76 bulunurken çözünür lif% 0.52-0.92'dir. Hurma kabuğunun 50 ° C'de ısıtılması / ağartılması, daha kaliteli diyet lifi tozu verebilir ve elde edilen ürün lif takviyeli gıdaların hazırlanması için çeşitli gıda uygulamalarını tutar (Akter ve diğerleri, 2010 [ 4 ]). Bir araştırma çalışmasında Chen ve ark. (1999 [ 22 ]) izole edilmiş roman 18, 19-secoursane triterpenoidler, kakisaponin B ( 1 ) ve kakisaponin C ( 2), Diospyros kaki'nin yapraklarından bir ursane tipi 28-nortriterpene, kakidiol ve bilinen triterpenoid rosamultin . Hurma kabuğunun iç etli kütleyi korumak için gerekli olan büyük miktarda polifenolik bileşikler içerdiğini ifade etmek ilginçtir (Kim ve diğerleri, 2006) [ 68 ].

    Şuraya gidin: Sağlıkla İlgili İddialar
    Trabzon hurması YAPRAKLARININ oksidatif stres, hipertansiyon, diabetes mellitus ve komplikasyonları ve ateroskleroza karşı yararlı etkileri vardır (Kotani ve diğerleri, 2000 [ 70 ]; Wang ve diğerleri, 2004 [ 121 ]). İçinde bulunan biyoaktif bileşenler, özellikle karotenoidler ve tanen, serbest radikalleri söndürmede, kardiyovasküler risk faktörlerini (kan basıncı ve kolesterol) azaltmada ve diyabet risklerini azaltmada ve kanser isyanına karşı etkililikte yardımcı olur (Park ve diğerleri, 2002 [ 99 ]; Lee ve diğerleri, 2006 [ 77 ]).

    Trabzon HURMASINDA bulunan tanenler sonunda fizyolojik tehditleri iyileştirmekten sorumludur. Antibakteriyel (Kawase ve diğerleri, 2003 [ 63 ]), anti-alerjik (Kotani ve diğerleri, 2000 [ 70 ]), serbest radikal temizleyici (Sakanaka ve diğerleri, 2005 [ 113 ]), kan basıncını düşüren (Jo ve diğerleri, 2003 [ 57 ]), antikanser ve antioksidan aktiviteler (Gali ve diğerleri, 1992 [ 34 ]). Taninin antioksidan aktiviteleri, nükleofil gruplarının (Laranjinha ve diğerleri, 1994 [ 74 ]; Ahn ve diğerleri, 2002 [ 2 ]) ve bazı antimutajenik özelliklerin (Achiwa ve diğerleri, 1997 [ 1 ] varlığından kaynaklanmaktadır.]) nitrojen reaktif bileşiklerin inhibisyonu yoluyla. Ayrıca inme (Wu ve Hwang, 2002 [ 124 ]; Jung ve ark., 2005 [ 59 ]) ve hipertansif bozuklukların (Sakanaka ve ark., 2005 [ 113 ]) insidansını azaltmada etkilidirler . Benzer şekilde flavonoidler, kan basıncını yükselten anjiyotensin dönüştürücü enzimin aktivitesini engeller ve prostaglandinleri oluşturan siklooksijenazı inhibe eder. Bazı in vitro çalışmalar, trombosit agregasyonu ve tromboz oluşumunun önlenmesinde flavonoidlerin inhibe edici etkilerini tasvir etmiştir. ABD'de yapılan araştırmaya göre, hurma tüketimi ile koroner kalp hastalığı arasında ters bir ilişki vardır (Hertog ve ark., 1995 [ 47 ]; Lee ve ark., 2006 [ 77]]). Karotenoidler ve kateşinler ayrıca çeşitli kanser hücre dizilerine karşı antikanser perspektifleri taşır (Achiwa ve diğerleri, 1997 [ 1 ]; Prakash ve diğerleri, 2000 [ 104 ]). Antosiyanidinler, in vivo ve in vitro antioksidatif aktiviteler (Rice-Evans ve ark., 1997 [ 108 ]) ve in vivo anti-mutajenik özellikler yürüttüğü için diğer flavonoidlere benzer . Ek olarak, hurma meyvesi hipokolesterolemik ve antioksidan potansiyele sahiptir (Yokozawa ve diğerleri, 2007 [ 128 ]; Gu ve diğerleri, 2008 [ 43 ]; Sun ve diğerleri, 2011 [ 117 ]; Gato ve diğerleri, 2013 [ 35 ]) . Trabzon hurmasıyla ilişkili ayrıntılı sağlık iddiaları burada açıklanmıştır ve bazı önemli noktalar da Tablo 4'te yer almaktadır.(Tablo 4)(Tablo 4'teki Referanslar: Karotenoidler: Mathews-Roth, 1993 [ 85 ]; Gaziano ve Hennekens, 1993 [ 36 ]; Tannin: Wu ve Hwang, 2002 [ 124 ]; Kotani ve diğerleri, 2000 [ 70 ]; Sakanaka ve diğerleri ., 2005 [ 113 ]; Gali ve diğerleri, 1992 [ 34 ]; Achiwa ve diğerleri, 1997 [ 1 ]; Flavanols: Gondo ve diğerleri, 1999 [ 37 ]; Suzuki ve diğerleri, 2005 [ 118 ]; Rice -Evans ve diğerleri, 1997 [ 108 ]; Anthocyanidins: Han ve diğerleri, 2002 [ 44 ]; Jung ve diğerleri, 2005 [ 59 ]; Yokozawa ve diğerleri, 2007 [ 128 ]; Gorinstein ve diğerleri, 1998 [ 38 ]; Gu ve diğerleri, 2008
    [ 43]).

    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-t-004.jpg'dir.
    Tablo 4
    İnsan sağlığı üzerinde olumlu etkisi olan hurma bileşenleri Koroner Bakım
    Gelişmiş toplumlarda, koroner kalp hastalıkları (KKH) insan hastalıklarının ve ölümlerinin başlıca nedenidir. Birkaç araştırmacı, kardiyovasküler sağlık rahatsızlıkları için önemli risk faktörlerini belirlemeye çalıştı. Bu bağlamda, biriken kanıtlar, ateroskleroz, dengesizlik lipid profili, hipertansiyon ve yüksek tansiyonun ana nedensel ajanlar olduğunu ileri sürdü. Dahası apolipoproteinler AI, B, CI ve CIII de önemli belirleyicilerdir (Larsson ve diğerleri, 2013 [ 75 ]; Antman ve Jessup, 2014 [ 6 ]). Ayrıca, serbest radikaller, düşük yoğunluklu lipoproteinlerin (LDL) oksidasyonunu başlatabilir, aterosklerozun başlamasından sorumlu başka bir risk faktörüdür (Aviram, 1993 [ 9 ]; Chen ve ark., 2003 [ 21 ]; Matsuura ve ark., 2006 [ 90]). LDL'nin oksidasyonu, arterlerdeki lipid birikimleri ile yakından bağlantılıdır ve bu nedenle ateroskleroz riskini artırır (Gorinstein ve diğerleri, 2000 [ 39 ]; Mashima ve diğerleri, 2001 [ 84 ]; Chen ve diğerleri, 2003 [ 21 ] ). Son birkaç on yılda beslenme uzmanları ve diyetisyenler, kardiyovasküler bozukluk riskini azaltmak için antioksidan açısından zengin kaynakların kullanımını içeren bu tür diyet stratejilerinin geliştirilmesine odaklandılar. Bu nedenle, bu doğal antioksidanlar açısından zengin diyetler talep edilmektedir (Kromhout ve diğerleri, 2002 [ 71 ]; Park ve diğerleri, 2006 [ 100 ]).

    Sorumlu olan daha yüksek miktarlarda meyve ve sebzelerin tüketimi, daha düşük konsantrasyonlarda toplam ve düşük yoğunluklu lipoprotein kolesterol ve doz-yanıt şeklinde CVD riski ile ilişkilidir (Hertog ve diğerleri, 1995 [ 47 ] ; Dauchet vd., 2009 [ 25 ]; Baldrick vd., 2011 [ 11 ]; Ros vd., 2013 [ 111 ]; Woodside vd., 2013 [ 123 ]). Trabzon hurması, hipokolesterolemik etkileri olan besleyici varlıklardan biridir. Sebepler, plazma lipit düşürücü ve antioksidan özelliklere sahip biyoaktif bileşiklerin varlığını içerir (Gorinstein ve diğerleri, 2000 [ 39 ]; Kim ve diğerleri, 2009 [ 69]]). Trabzon hurmasının biyoaktivitesi, suda çözünür diyet lifleri, mineralleri, eser elementleri ve fenolikleri ile ilişkilidir (Hertog ve diğerleri, 1995 [ 47 ]). Diyet lifi, hurmada% 1.20-1.76 miktarlarında bulunur ve çözünür lif% 0.52-0.92'dir. Diyet lifi, lipid metabolizması üzerinde iyi tanımlanmış etkilere sahiptir, bu nedenle hurma, diyet lifi için önerilen diyet ödeneği, yani 30-45 g (Roller ve diğerleri, 2007 [ 110 ]) karşılanmasına yardımcı olabilir . Diyet liflerinin yanı sıra, hurma meyvelerinde bulunan mineraller ve temel eser elementler koroner aterosklerozu ve komplikasyonlarını önleyebilir (Baxter ve diğerleri, 1996 [ 14 ]; Kiechl ve diğerleri, 1997 [ 66 ]).

    Trabzon hurması takviyesi, plazma lipid metabolizmasını ve toplam antioksidan aktiviteyi geliştirebilir (Gorinstein ve diğerleri, 1998 [ 38 ]). Bilimsel araştırma sayısı, tüm hurmanın veya parçalarının hiperkolesterolemik sıçanlarda lipid düşürücü etkilere sahip olduğuna dair kanıtlar sağlamıştır. Trabzon hurması yaprak tozu, kısmen artan dışkı lipid atılımı yoluyla plazma ve hepatik lipid seviyelerini iyileştirmiştir (Jung ve diğerleri, 2012 [ 60 ]). Bu yararlı etkiler, fenolik bileşiklerinin (1.15 g / 100 g) ve yüksek lif (63.48 g / 100 g) içeriğinin (Innami ve diğerleri, 1998 [ 53 ]; Gorinstein ve diğerleri, 1999 [ 38) özelliklerinden kaynaklanıyor olabilir. ]). Başka bir çalışmada Lee ve ark. (2006 [ 77]) takviye, bütün hurma yaprağını (% 5) toz haline getirmiş ve takviyenin kan kolesterolü ve trigliseridde düşüşe neden olduğunu gözlemlerken, HDL-C / toplam-C oranında da artış gözlenmiştir. Başka bir çalışmada Matsumoto ve ark. (2006 [ 86]) genç hurma meyvesi (% 10) ile takviye edilmiş diyet, benzer sonuçlarla, yani toplam & LDL kolesterol ve trigliseridde düşüş. İyileştirilmiş lipid profilinin, kolesterol 7 alfa-hidroksilaz (CYP7A1) gen ekspresyonunun artan ekspresyonuna bağlı olabileceğini bildirdiler. CYP7A1, safra asidi sentezini düzenler ve böylece kolesterol homeostazının dengelenmesinde zorunlu bir rol oynar. Daha önce belirtildiği gibi, daha yüksek miktarlarda LDL, oksidasyona karşı dirençli olmaları nedeniyle insan sağlığı için zararlıdır ve bu da endotelyal vasküler hücrenin arterlere proliferasyonuna ve dolayısıyla ateroskleroz tehdidine yol açan inflamatuar bir patlamaya yol açabilir (Singh ve ark., 2007 [ 115]). Trabzon hurması ve flavon gibi biyoaktif molekülleri, yüksek seviyelerde LDL'ye maruz kalan sıçan vasküler düz kas hücrelerinin proliferasyonunu inhibe edebilir. Hiperkolesterolemi ile ilişkili vasküler düz kas hücresi büyümesini inhibe ederek vasküler koruma uygulayabilirler (Ouyang ve ark., 2004 [ 97 ]). Daha sonra Matsumoto ve ark. (2008 [ 88 ]), 10 hafta boyunca% 5 oranında genç hurma meyvesinin (YP) etkisini kontrol etmek için çalışmalar yaptı. YP, plazma kilomikronu, çok düşük yoğunluklu lipoproteini (VLDL) ve LDL kolesterolleri ve trigliseridi önemli ölçüde düşürmüştür. Ek olarak, diyet hurmasının lipit düşürücü tepkisine (% 7.0) dışkıda safra asidi atılımında bir artış eşlik etti ve sonunda hepatik kolesterol ve trigliserit değerlerinin normale dönmesine neden oldu (Lee ve ark., 2006 [77 ]). Trabzon hurması-sirke geleneksel fermente bir üründür ve geleneksel ilaçlarda ve mutfak uygulamalarında kullanılmaktadır. Bununla birlikte, hurma sirkesi (2 mL / kg vücut ağırlığı), karaciğer kolesterolünü düşürmenin yanı sıra serum trigliserit ve kolesterolü önemli ölçüde azaltma potansiyeline sahiptir (Moon ve Cha, 2008 [ 93 ]).

    Bazı Asya ülkelerinde hurma yaprakları, hipertansiyonu iyileştirmek için çay formülasyonlarında kullanılmaktadır. Klinik deneyler, Renin anjiyotensin sisteminin (RAS) ve anjiyotensin dönüştürücü enzimin (ACE), hipertansiyonu kontrol etmek veya yönetmek için önemli hedefler olduğunu ortaya koydu. Sa vd. (2005 [ 112 ]) antikoagülan fraksiyonunu hurma yapraklarından ayırdı. Ekstraksiyon fraksiyonunun trombin süresini (TT), aktive parsiyel tromboplastin süresini (APTT) ve protrombin zamanını (PT) geciktirdiğini bildirdiler. Etkiler, ACE aktivitesini baskıladığı bildirilen astragalinin varlığından kaynaklanıyor olabilir (Paul ve diğerleri, 2006 [ 101 ]; Cho ve diğerleri, 2014 [ 24]). ACE inhibitörlerinin çeşitli kardiyovasküler hastalıkların kronik tedavisinde önemi artık iyice yerleşmiştir (Remuzzi ve Ruggenenti, 2006 [ 107 ]; Lee ve diğerleri, 2007 [ 78 ]) ve birkaç ACE inhibitörü piyasada bulunmaktadır. Daha sonra Matsumoto ve ark. (2010 [ 87]) Trabzon hurmasının hipolipidemik etkileri ve safra asidi bağlama özelliklerini doğruladı. Hurma meyvelerinin dışkı yoluyla safra asidi atılımını arttırdığı görüşündeydiler. Safra asitlerinin atılımı, karaciğer ve kandaki azalmış lipid konsantrasyonu ile yakından bağlantılıdır. Etki mekanizması, sterol düzenleyici element bağlayıcı protein-2 geninin, 7a-hidroksilazın ve düşük yoğunluklu lipoprotein reseptörünün ekspresyonunun yukarı regülasyonu etrafında ortalanmış olarak kaldı. Diyet hurmasının etkinliği, radikal süpürme etkisi ve lipid peroksidasyonunun engellenmesi nedeniyle felç insidansını önlemiştir (Ahn ve diğerleri, 2002 [ 2 ]).

    Özetle, hurma ve ürünlerinin kolesterol düşürücü etkileri, kolesterol emiliminin, kolesterol ve yağ asitlerinin sentezinin azalmasından kaynaklanmaktadır. Gerçekte, fenolik bileşikler ve diyet lifi, kardiyoprotektif etkilerinden sorumlu ana bileşenlerdir.

    Antioksidan potansiyeli ve DNA hasarına karşı koruma
    Oksidasyon süreci, serbest radikallerin üretimi ile birlikte yaşamın canlılığı için gereklidir. Reaktif oksijen türlerinin (ROS) üretimi ile endojen antioksidan savunma sistemi arasında doğal bir denge vardır. Bu reaktif serbest radikaller, hücreye bağlı yapılara ve proteinler ve DNA gibi bazı temel bileşenlere zarar verebilecek oksidatif stresin indüksiyonuna neden olur. Bununla birlikte, dengesizlik, antioksidanların takviyesi ile giderilebilir. Bu bağlamda, polifenoller, karotenoidler, flavonoidler, tokoferoller, antosiyaninler ve tanenler oldukça önemlidir (Ahn ve diğerleri, 2002 [ 2 ]; Lee ve diğerleri, 2006 [ 77 ]; Butt ve diğerleri, 2008 [ 19 ] Gu ve diğerleri, 2008 [ 43 ]).

    Trabzon hurması doğal olarak proantosiyanidinler, tanenler, kateşinler (Suzuki ve diğerleri, 2005 [ 118 ]), karotenoidler, sinapin, lökoantosiyanidin, kateşin, kaempferol, kersetin, vb. [ 100 ]). Bu biyoaktif bileşenlerin çoğu serbest radikalleri temizler, metalleri bağlar ve lipit peroksidasyonunu engeller. Yoğunlaştırılmış tanenler ve fl avonoidler ayrıca hurmanın antioksidan potansiyeline katkıda bulunur, bu nedenle yaşam tarzıyla ilgili çeşitli bozuklukları önlemek için etkili ajanlar olarak düşünülebilir (Gali ve diğerleri, 1992 [ 34 ]; Gorinstein ve diğerleri, 1994 [ 42 ]; Lee ve diğerleri. , 2006 [ 77]). Trabzon hurması ayrıca antioksidan özelliklere sahip karotenoidler, polifenoller ve askorbik asit içerir (Yokozawa ve diğerleri, 2007 [ 128 ]) ve bunların çoğu oksidatif stres ile ilişkili hastalıklara karşı koruyucu roller oynayabilir (Homnava ve diğerleri, 1990 [ 49 ]; Suzuki ve diğerleri, 2005 [ 118 ]; Bubba ve diğerleri, 2009 [ 18]). Hurmada bulunan proantosiyanidinler (PA'ler) de güçlü antioksidanlar olarak kabul edilir, bu nedenle oksidatif stresin neden olduğu rahatsızlıkları azaltmak için önemli bir faktör olabilir. Bununla birlikte, tıbbi amaçlar için etkinliklerinin daha fazla ayrıntıya ihtiyacı vardır. Bir çalışmada, oligomer ve polimerik PA'lar, serbest radikalleri süpürme (oksijen ve nitrojen reaktif türler) ve lipid peroksidasyon inhibisyonu gibi mekanizmayı içeren oksidatif stresi bastırdı (Kim ve Yokozawa, 2009 [ 69 ]). Ek olarak, PA'ların murin tirozinaz ve melanin sentezi üzerinde yine oksidatif stresin baskılanmasına bağlı olabilecek güçlü bir inhibitör etkisi vardı (Kim ve diğerleri, 2010 [ 67 ]).

    Bilim adamları, antioksidan ve hurmayı test etti ve çeşitli in vitro ve in vivo deneylerle biyoaktif hale geldi . Böyle bir çalışmada Chen ve ark. (2008 [ 23 ]) sırasıyla Mopan hurması i..e 23.575 ve 22.597 mikrom trolox eq / g fw'nin ABTS ve DPPH radikallerine karşı radikal temizleme aktivitelerini gözlemledi. Proantosiyanidin, yaşlanma sürecinde koruyucu potansiyel oksidatif hasarı destekler (Lee ve diğerleri, 2008 [ 79 ]). Daha sonra Lee ve ark. (201 [ 80]) Senescence ile hızlandırılmış fare eğilimli / 8 (SAMP8) 'de uzamsal ve nesne tanıma bozukluğundaki PA'ların oral uygulamasının olumlu yönlerini incelemiş ve bildirmiştir. Trabzon hurmasının yaşlanmayla birlikte hafıza bozulmasına karşı koruma sağlamadaki olumlu etkisi, oligomerik proantosiyanidinlerin varlığından kaynaklanmaktadır (Yokozawa ve diğerleri, 2014 [ 129 ]). Daha önce, fitokimyasal açıdan zengin fraksiyonların (aseton özütü) tirozinaz ekspresyonunu baskıladığı ve böylece fare B16 melanom hücrelerinde melanin biyosentezini inhibe ettiği bildirilmişti (Ohguchi ve diğerleri, 2010 [ 96 ]). Sonuç olarak, hurma yapraklarından elde edilen özütler, antioksidan bakış açıları nedeniyle doğal cilt bakımında önemli kabul edilebilir (Mure ve diğerleri, 2007 [ 94 ]).

    Kanser isyanına ve DNA hasarına karşı Trabzon hurması önleyici rol
    Dünya çapında birçok araştırmacı, hurmanın antikanser perspektiflerine ve biyoaktif bileşenlerine ilişkin kanıtlar sağlamaya çalıştı (Jung ve diğerleri, 2013 [ 58 ]). Bu bağlamda Khanal ve ark. (2010 [ 64 ]) 24-hidroksiursolik asidin antikanser özelliklerini inceledi. Seçilen bileşiğin, kolon kanserinde (HT-29 hücreleri) AMP ile aktive edilmiş protein kinaz (AMPK) yolağının aktivasyonu yoluyla hücre proliferasyonunu inhibe ettiğini ve ayrıca siklooksijenaz (COX-2) ekspresyonunu inhibe ettiğini, poli (ADP-ribozun aktivasyonu ile apoptozu indüklediğini bildirdiler. ) polimeraz (PARP), kaspaz-3 ve Ser15'te p53'ün fosforilasyonu. Ek olarak, 24-hidroksiursolik asit, EGF ile uyarılan hücre dışı sinyalle düzenlenen kinaz (ERK) fosforilasyonunu bloke etti. Son zamanlarda Kim ve ark. (2010 [ 67]) D. kaki yapraklarının (KV-1) aseton ekstresinin, hurma yapraklarının HL-60 hücre farklılaşmasını artırma yeteneğine sahip olduğunu gösteren HL-60 hücre farklılaşması üzerindeki etkisini araştırdı ve kan kanserinde yararlı olabileceğini öne sürdü. (akut promiyelositik lösemi) tedavisi. Etki modu, protein kinaz C (PKC) ve ERK yollarının inhibisyonunu içerir. 'H önlenir Trabzon hurması ekstraktlar 2 O 2 insan periferal lenfositlere teşvikli DNA hasarı (Kim ve ark., 2006 [ 68 ]). Daha önce Bei ve ark. (2005 [ 15 ]) NG108-15 hücrelerini, Diospyros kaki L'nin (FLDK-P70) yapraklarından elde edilen Flavonoidler ile önceden tedavi etmiş ve bu da H 2 O 2'nin hafifletilmesine neden olmuştur- yukarı regülasyon Bcl-2 ekspresyonu ve redoks dengesizliğini iyileştirerek indüklenen hücre hasarı ve apoptoz. FLDK-P70 ayrıca glutatyon ve glutatyon peroksidaz dahil hücre içi endojen antioksidanlardaki düşüşü modüle ettiğini bildirdi.

    Reaktif oksijen / nitrojen türleri veya serbest radikaller, nihayetinde kanserli büyümeye ve yaşlanma ve dejeneratif bozukluklarda önemli aracıya yol açabilen DNA hasarına neden olabilir (Michel ve diğerleri, 2012 [ 91 ]). Karotenoidler ve flavonoidler, serbest radikalleri temizlemek için mükemmel yeteneklere sahip yüksek etkili doğal antioksidanlar arasındadır (Hanasaki ve diğerleri, 1994 [ 45 ]; Fiedor ve Burda, 2014 [ 33 ]). Ayrıca, polifenoller ve antosiyaninler gibi fitokimyasallar da gıdaların antikanser perspektifiyle bağlantılıdır. Bu biyoaktif bileşenler, çeşitli genotoksik faktörlerin neden olduğu DNA hasarını azaltabilir (Kapiszewska ve ark., 2005 [ 61]). Araştırmacılar hurma ve fraksiyonunun etkilerini incelemeye çalıştılar ve böyle bir çalışma In-Cheol ve arkadaşları tarafından yapıldı. (2010). 50 mg / ml ekstraktların H 2 O 2 indüklü DNA hasarına karşı daha yüksek koruma sağladığını gözlemlediler (Şekil 5(Şekil 5); Şekil 5'teki referans: Jang ve diğerleri, 2010 [ 56 ]). Bu etkiler, karotenoidlerin ve flavonoidlerin (Takahashi ve ark., 2006 [ 119 ]), tanenin (Lee ve ark., 2007 [ 78 ]) ve askorbik asidin varlığına bağlı olabilir .
    Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı EXCLI-14-542-g-005.jpg'dir.
    Şekil 5
    Metanol, etanol, aseton ve su ile hurma kaliks, tohum, kabuk ve etten elde edilen ekstrelerin (50 μg / ml) insan lökositinde 200 μM H2O2 kaynaklı DNA hasarı üzerindeki etkisi. Değerler, üçlü deneylerin standart sapması ile ortalamadır. NC,% 1 DMSO ile muamele edilmiş negatif kontrol; PC, 200 μM H2O2 ile işlenmiş pozitif kontrol. Duncan'ın çoklu aralık testlerine göre aynı mektubu paylaşmayan değerler birbirinden önemli ölçüde farklıdır (p <0.05). (Nezaket: Jang ve diğerleri, 2010)
    Hurmanın antioksidan potansiyeli, dejeneratif bozukluklar, kanser ve cilt tonunun iyileştirilmesi dahil olmak üzere çeşitli hastalıkları iyileştirmek için kullanılabilir. Bu nedenle hurma ve biyoaktif molekülleri, gıda veya kozmetik uygulamalar olarak potansiyeldir.

    Şeker hastalığı
    Heterojenliğe rağmen, hiperglisemi ve buna bağlı komplikasyonlar diyabetik hastalarda en sık görülen metabolik bozukluklardır. Diabetes mellitus, hiperglisemi, azalmış insülin konsantrasyonları veya duyarlılığı gibi birçok faktörden kaynaklanabilir. Bazen pankreasın beta hücreleri zarar görür ve bu da insülin üretimini sınırlar. Bu koşullar, vücutta insülin ile uyarılan uygunsuz glikoz taşınmasına neden olur (Ziel ve diğerleri, 1988 [ 136 ]). Bu sorunların üstesinden gelmek için, metformin, rosiglitazon ve pioglitazon gibi bazı hedefli anti-diyabetik ilaçlar glikoz düşürücü ajanlar olarak kullanılmaktadır (Yonemitsu ve ark., 2001 [ 130)]). İlaç tedavileri genellikle zamanla etkisini yitirir ve doğal bileşikler diabetes mellitus ve buna bağlı komplikasyonları tedavi etmek için dikkat çekmektedir (Wild ve diğerleri, 2004 [ 122 ]; Lapshina ve diğerleri, 2006 [ 73 ]). Asya toplumlarında, doğal ürünler, tip 2 diabetes mellitusu iyileştirmek için daha popülerdir (Sa ve diğerleri, 2005 [ 112 ]). Bununla birlikte, bu ilaçlar genellikle artan yan etkilere eşlik eder. Buna karşılık, doğal gıdalar, diabetes mellitus tehdidini ve komplikasyonlarını kontrol etmek için bu ilaçların yerini almaktadır (Sultan ve diğerleri, 2009 [ 116 ]).

    Zengin fitokimyadan dolayı Trabzon hurması, diabetes mellitusun önlenmesi ve iyileştirilmesinde zorunlu role katkıda bulunabilir. Bu bağlamda Kawakami ve ark. (2010 [ 62 ]), hurma yaprağının diyet nişastası ile birlikte etkilerini inceledi ve kemirgen modelleme çalışmalarında kan şekeri seviyesinde doza bağlı düşüş gözlemledi. Pankreas alfa-amilaz inhibisyonunun, persimmonun antidiyabetik rolünden sorumlu ana mekanizmalardan biri olabileceği görüşündeydiler (Ramasubbu ve ark., 2004 [ 106 ]). Bununla birlikte, antidiyabetik etkiler, hurmanın biyoaktif bileşenlerinin polimerizasyon derecesine bağlıdır. Lee vd. (2007 [ 81]) polimerik proantosiyanidinlerin a-amilazı önemli ölçüde inhibe ettiğini ancak oligomerlerin inhibitör potansiyelinin aynı enzime karşı biraz daha zayıf olduğunu açıkladı. Bunun aksine, oligomerik proantosiyanidinlerin a-glukosidaza karşı inhibe edici potansiyeli, oligomerik proantosiyanidinlerden daha yüksekti. Daha yakın zamanlarda Xiao ve ark. (2013 [ 125]) anti α-amilaz aktivitelerine özel referansla diyet polifenollerinin diabetes mellitustaki rolünü gözden geçirdiler. Farklı araştırmalardan önemli noktaları sundular ve moleküler yapıların, örneğin flavonoidlerin hidroksilasyonu, 4-karbonil grubu ile konjügasyonda doymamış 2,3-bağ gibi inhibisyonu etkilediği sonucuna vardılar. Galoile kateşinler, alaşımsız kateşinlerden daha yüksek inhibisyona sahiptir; katekol tipi kateşinler pirogallol tipi kateşinlerden daha güçlüydü, siyanidin ile bağlanan glukozit kısmı galaktozid ve diglükositten daha yüksek inhibisyona neden oldu ve-galloyl gruplu ellagitanninler, a-galloyl ve nongalloyl ellagitanninlerden daha etkilidir. Karşılaştırıldığında, glikosilasyon,

    Trabzon hurması yaprakları ayrıca insüline bağlı glikoz taşınmasının modülasyonu nedeniyle diyabete karşı terapötik bir potansiyele sahip olabilir. Trabzon hurması yaprakları, insülinle uyarılan kas glukoz taşınmasını etkiler ve bu nedenle diyabet tedavisi için insülin duyarlılaştırıcı olarak kullanılabilir (Kawakami ve ark., 2010 [ 62 ]). Trabzon hurması yapraklarının etil asetatla ekstrakte edilmiş fraksiyonu, suyla ekstrakte edilmiş ve etanolle çökeltilmiş fraksiyonu, diyabet tedavisinde potansiyel değere sahiptir. Antioksidanın etki mekanizması, hurma yapraklarından elde edilen ekstraktların hipoglisemik etkileri ile ilgilidir (Deng ve ark., 2012 [ 27 ]).

    Diabetes mellitus, istenmeyen Schiff bazı ve Amadori ürünlerinin üretimine yol açabilen proteinlerin enzimatik olmayan glikasyonuna bağlı oksidatif stres ile sonuçlanır (Robertson ve diğerleri, 2003 [ 109 ]). Ayrıca diyabetin neden olduğu oksidatif stres, vücudun enzim aracılı antioksidan savunma sistemini daha da zayıflatır. Bu nedenle, oksidatif stresin azalması patolojik hasarı ve diyabet komplikasyonlarını iyileştirmek için önemlidir (Basta ve diğerleri, 2004 [ 13 ]; Lapshina ve diğerleri, 2006 [ 73 ]). Trabzon hurması, antioksidanlar açısından zengindir ve diyabet komplikasyonlarını kontrol etmek için kullanılabilecek reaktif oksijen türlerine (Han ve diğerleri, 2002 [ 44 ]; Jung ve diğerleri, 2005 [ 59 ]) karşı güçlü temizleme etkisine sahiptir . Lee vd. (2008 [79 ]) bir db / db tip 2 diyabet modelinde hurma kabuğundan proantosiyanidinlerin koruyucu etkisini araştırdı. Db / db farelerde artan oksidatif stres, günlük 10 mg / kg vücut ağırlığı oligomerlerinin uygulanmasıyla hafifletildi. Moon ve Cha (2008 [ 93 ]) tarafından önerildiği gibi, asetil-koenzim A karboksilaz mRNA azaldı ve hepatik karnitin palmitoiltransferaz-I mRNA arttı . Trabzon hurması polifenolleri (PPP), yüksek moleküler-persimmon soyma polifenolleri (HMPPP) ve düşük moleküler-persimmon soyma polifenolleri (LMPPP) olarak kategorize edilebilir. Düşük moleküler fraksiyonlar veya LMPPP, daha yüksek miktarlarda oligomerik proantosiyanidin içerir, oksidatif stresin kapsamını azaltmada HMPPP'den (polimerik proantosiyanidinlerden zengin) daha etkilidir (Yokozawa ve diğerleri, 2007 [ 128]). Trabzon hurması ve biyoaktif bileşenleri / fraksiyonları ayrıca siklooksijenaz-2 ve indüklenebilir nitrik oksit sentazın protein ekspresyonlarını da zayıflattı (Yokozawa ve diğerleri, 2007 [ 128 ]; Lee ve diğerleri, 2008 [ 79 ]). Dahası, Trabzon hurması, serbest radikalleri süpürme ve indirgenmiş glutatyon / oksitlenmiş glutatyon oranını yükselttiği için diyabet baskılamasında inflamatuar tepkileri iyileştirebilir (Lee ve diğerleri, 2007 [ 78 ]). Başka bir araştırmada, diyabetik sıçanlara günde 50 ve 100 mg / kg vücut ağırlığında hurma özütünün oral uygulamasının, anlamlı doza bağlı hipoglisemik ve hipolipidemik aktiviteye sahip olduğu bulunmuştur (Dewanjee ve ark., 2009 [ 28]). Özetle, hurma veya fonksiyonel bileşenlerinin uygulanması, özellikle şeker hastalığı için tasarlanmış önleyici stratejilerde veya kan basıncını, kan lipidlerini düşürerek ve oksidatif stres ve iltihap tepkilerini modüle ederek diyabet komplikasyonunun boyutunu azaltmada etkili olabilir (Lee ve ark. , 2008 [ 79 ]).

    Şuraya gidin: Sonuçlar
    Trabzon hurması doğal olarak proantosiyanidinler, fl avonoidler, tanenler, fenolik, karotenoidler, diyet lifi ve benzeri gibi biyoaktif moleküller ile verilir. Trabzon hurması yaprakları ve meyveleri, hipokolesterolemik, anti-ateroskleroz ve antioksidan bakış açıları nedeniyle koroner sağlık için zorunlu bir öneme sahiptir. Her ne kadar hipotansif ve antikanser tepkileri, hurma ve biyoaktif özellikle yoğun tanen ve flavonoidler için bildirilmiş olsa da, yine de terapötik mekanizmalarını ortaya çıkarmak için daha fazla araştırma yapılmasını gerektirmektedir. Son olarak, hurma ve biyoaktif bileşenlerinin kullanımı diabetes mellitus yükünün azaltılmasında etkili olabilir. Bununla birlikte, titizlik getirmek için tutarlı ve sistematik araştırmalara hala ihtiyaç vardır.

    Şuraya gidin: Referanslar
    1. Achiwa Y, Hibasami H, Katsuzaki H, Imai K, Komiya T. Trabzon hurması (Diospyros kaki) ekstresi ve ilgili polifenol bileşiklerinin insan lenfoid lösemi hücrelerinin büyümesi üzerindeki inhibe edici etkileri. Biosci Biotechnol Biochem. 1997; 61 : 1099–1101. [ PubMed ] [ Google Scholar ]
    2. Ahn HS, Jeon TI, Lee JY, Hwang SG, Lim Y, Park DK. Trabzon hurması ve üzüm çekirdeği ekstresinin antioksidatif aktivitesi: in vitro ve in vivo. Nutr Res. 2002; 22 : 1265–1273. [ Google Scholar ]
    3. Akagi T, Ikegami A, Yonemori K. DkMyb2 Trabzon hurmasının (Diospyros kaki Thunb.) Yaraya bağlı transkripsiyon faktörü, proantosiyanidin regülasyonuna katkıda bulunur. Planta. 2010; 232 : 1045–1059. [ PubMed ] [ Google Scholar ]
    4. Akter MS, Ahmed M, Eun JB. Ağartma ve kurutma sıcaklıklarının kurutulmuş hurma kabuğu tozunun fizikokimyasal özellikleri, diyet lifi bileşimi ve antioksidan ile ilgili parametreleri üzerindeki etkisi. Int J Food Sci Nutr. 2010; 61 : 702–712. [ PubMed ] [ Google Scholar ]
    5. Akyıldız A, Aksay S, Benli H, Kıroğlu F, Fenercioğlu H. Farklı sıcaklıklarda dehidrasyon sırasında Trabzon hurmasının bazı özelliklerindeki değişimlerin belirlenmesi. J Gıda Müh. 2004; 65 : 95–99. [ Google Scholar ]
    6. Antman EM, Jessup M. Kronik kardiyovasküler bozukluklar için klinik uygulama kılavuzları: gelecek için bir yol haritası. JAMA. 2014; 311 : 1195–1196. [ PubMed ] [ Google Scholar ]
    7. Arnal L, Besada C, Navarro P, Salvador A. Trabzon hurması meyvesi cv kalitesinin korunması üzerinde kontrollü atmosferlerin etkisi. Rojo Brillante. J Food Sci. 2008; 73 : S26 – S30. [ PubMed ] [ Google Scholar ]
    8. Asgar MA, Yamauchi R, Kato K. Güneşte kurutma işlemi sırasında Japon hurması meyvesindeki pektinin modifikasyonu. Food Chem. 2003; 81 : 555–560. [ Google Scholar ]
    9. Aviram, M Düşük yoğunluklu lipoprotein ve aterosklerozun modifiye edilmiş formu. Ateroskleroz. 1993; 98 : 1–9. [ PubMed ] [ Google Scholar ]
    10. Bae DK, Choi HJ, Son JH, Park MH, Bae JH, An BJ, vd. Kore hurması (Diospyros kaki L. folium) yaprağından fonksiyonel içecek geliştirme ve stabilite çalışması. Korece J Food Sci Technol. 2000; 32 : 860–6. [ Google Scholar ]
    11. Baldrick FR, Woodside JV, Elborn JS, Young IS, McKinley MC. İnsan müdahalesi çalışmalarında meyve ve sebze alımının biyobelirteçleri: sistematik bir inceleme. Crit Rev Food Sci Nutr. 2011; 51 : 795–815. [ PubMed ] [ Google Scholar ]
    12. Barry TN, Allsop TF, Redekopp C. Koyunlar için Lotus pedunculatus'un besin değerinde yoğunlaştırılmış tanenlerin rolü. 5. Endokrin sistem ve yağ dokusu metabolizması üzerindeki etkiler. Br J Nutr. 1986; 56 : 607–614. [ PubMed ] [ Google Scholar ]
    13. Basta G, Schmidt AM, De Caterina R. İleri glikasyon son ürünleri ve vasküler inflamasyon: diyabette hızlandırılmış ateroskleroz için çıkarımlar. Cardiovasc Res. 2004; 63 : 582–592. [ PubMed ] [ Google Scholar ]
    14. Baxter GF, Sümeray MS, Walker JM. Enfarktüs boyutu ve magnezyum: deneysel çalışmalardan LIMIT-2 ve ISIS-4 ile ilgili bilgiler. Lancet. 1996; 348 : 1424–1426. [ PubMed ] [ Google Scholar ]
    15. Bei W, Peng W, Ma Y, Xu A. Diospyros kaki'nin yapraklarından elde edilen flavonoidler, NG108-15 hücrelerinin hidrojen peroksit kaynaklı hasarını azaltır. Life Sci. 2005; 76 : 1975–1988. [ PubMed ] [ Google Scholar ]
    16. Bibi N, Khattak AB, Mehmood Z. Hurma meyvesi Diospyros kaki'nin kalite iyileştirmesi ve raf ömrünün uzatılması. J Gıda Müh. 2007; 79 : 1359–63. [ Google Scholar ]
    17. Bravo L, Saura-Calixto F, Goni I. Elma hamurundan diyet lifi ve tanenlerin sıçanlarda dışkı bileşimi üzerindeki etkileri. Br J Nutr. 1992; 67 : 463–473. [ PubMed ] [ Google Scholar ]
    18. Bubba MD, Giordani E, Pippucci L, Cincinelli A, Checchini L, Galvan P. Ağaçta büyüme ve olgunlaşma sırasında ve farklı hasat sonrası muamelelere yanıt olarak büzücü hurmalardaki tanen askorbik asit ve şeker içeriğindeki değişiklikler. J Food Comp Anal. 2009; 22 : 668–677. [ Google Scholar ]
    19. Butt MS, Nazir A, Sultan MT, Schroën K. Morus alba L Nature'ın fonksiyonel toniği. Trendler Food Sci Technol. 2008; 19 : 505–512. [ Google Scholar ]
    20. Chen G, Wang ZQ, Jia JM. Diospyros kaki'nin yapraklarından üç küçük yeni triterpenoid. Chem Pharm Bull (Tokyo) 2009; 575 : 532–535. [ PubMed ] [ Google Scholar ]
    21. Chen K, Thomas SR, Keaney JF., Jr LDL oksidasyonunun ötesinde: vasküler sinyal transdüksiyonunda ROS. Ücretsiz Radic Biol Med. 2003; 35 : 117–132. [ PubMed ] [ Google Scholar ]
    22. Chen KS, Zheng JT, Zhang SL, Gavin SR. Etilenin meyve olgunlaşması ve yumuşamasındaki rolü. J Zhejiang Agr Üniv. 1999; 25 : 251–254. [ Google Scholar ]
    23. Chen XN, Fan JF, Yue X, Wu XR, Li LT. Trabzon hurması Diospyros kaki L cv Mopan'da radikal süpürme aktivitesi ve fenolik bileşikler. J Food Sci. 2008; 731 : C24 – C28. [ PubMed ] [ Google Scholar ]
    24. Cho IH, Gong JH, Kang MK, Lee EJ, Park JH, Park SJ, vd. Astragalin, oksidatif strese duyarlı MAPK sinyallemesini modüle ederek hava yolu eotaksin-1 indüksiyonunu ve epitel apoptozunu inhibe eder. BMC Pulm Med. 2014; 14 : 122. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    25. Dauchet L, Amouyel P, Dallongeville J. Meyveler, sebzeler ve koroner kalp hastalığı. Nat Rev Cardiol. 2009; 6 : 599–608. [ PubMed ] [ Google Scholar ]
    26. Dembitsky VM, Poovarodom S, Leontowicz H, Leontowicz M, Vearasilp S, Trakhtenberg S, vd. Bazı egzotik meyvelerin çoklu beslenme özellikleri: Biyolojik aktivite ve aktif metabolitler. Gıda Res Int. 2011; 44 : 1671–701. [ Google Scholar ]
    27. Deng H, Wen Q, Luo Y, Huang Y, Huang R. Trabzon hurması yapraklarından elde edilen farklı özütlerin diyabetik farelerde antioksidan aktivite üzerindeki etkisi. Zhong Nan Da Xue Xue Bao Yi Xue Yasağı. 2012; 37 : 469–473. [ PubMed ] [ Google Scholar ]
    28. Dewanjee S, Das AK, Sahu R, Gangopadhyay M. Diospyros peregrina meyvesinin antidiyabetik aktivitesi: deneysel tip 2 diyabette hiperglisemi hiperlipidemi ve artırılmış oksidatif stres üzerindeki etki. Food Chem Toxicol. 2009; 4710 : 2679–2685. [ PubMed ] [ Google Scholar ]
    29. Dillard CJ, Alman JB. Fitokimyasallar: nutrasötikler ve insan sağlığı. J Sci Food Agric. 2000; 80 : 1744–56. [ Google Scholar ]
    30. Dixon AR, Xie DY, Sharma SB. Proantosiyanidinler - flavonoid araştırmalarında son bir sınır mı? Yeni Fitolog. 2005; 165 : 9–28. [ PubMed ] [ Google Scholar ]
    31. Ercişli S, Akbulut M, Özdemir O, Şengül M, Orhan E. Türkiye'de Trabzon hurması (Diospyrus kaki L.) genotipleri arasında fenolik ve antioksidan çeşitliliği. Int J Food Sci Nutr. 2007; 59 : 477–482. [ PubMed ] [ Google Scholar ]
    32. Fennema OR. Taze ve donmuş gıdalarda vitamin kaybı. Food Technol. 1977; 31 : 32. [ Google Scholar ]
    33. Fiedor J, Burda K. İnsan sağlığı ve hastalıklarında antioksidan olarak karotenoidlerin potansiyel rolü. Besinler. 2014; 6 : 466–488. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    34. Gali HU, Perchellet EM, Klish DS, Johnson JM, Perchellet JP. Hidrolize edilebilir tanenler: in vivo 12-O-tetradekanoilfobol-13-asetat ile tedavi edilen fare derisinde güçlü hidroperoksit üretimi ve tümör gelişimi inhibitörleri. Int J Cancer. 1992; 51 : 425–32. [ PubMed ] [ Google Scholar ]
    35. Gato N, Kadowaki A, Hashimoto N, Yokoyama S, Matsumoto K. Trabzon hurması meyvesi tanen bakımından zengin lif, insanlarda kolesterol seviyelerini düşürür. Ann Nutr Metab. 2013; 62 : 1–6. [ PubMed ] [ Google Scholar ]
    36. Gaziano JM, Hennekens CH. 1993. Beta-karotenin kardiyovasküler hastalıkların önlenmesindeki rolü. Ann NY Acad Sci. 1993; 691 : 148–155. [ PubMed ] [ Google Scholar ]
    37. Gondo M, Tanaka N, Tanaka T, Shimomura K, Nakanishi F, Ishimaru KA. Diospyros kaki'nin kalus kültürlerinden elde edilen naftalin glikozit. Fitokimya. 1999; 51 : 879–881. [ Google Scholar ]
    38. Gorinstein S, Bartnikowska E, Kulasek G, Zemser M, Trakhtenberg S. Diyet hurması, kolesterol içeren diyetlerle beslenen sıçanlarda lipit metabolizmasını iyileştirir. J Nutr. 1998; 128 : 2023–7. [ PubMed ] [ Google Scholar ]
    39. Gorinstein S, Kulasek GW, Bartnikowska E, Leontowicz M, Zemser M, Morawiec M, vd. Bütün hurma veya fenol içermeyen hurma ile desteklenen diyetlerin kolesterol ile beslenen sıçanlar üzerindeki etkileri. Food Chem. 2000; 70 : 303–308. [ Google Scholar ]
    40. Gorinstein S, Zachwieja Z, Folta M, Barton H, Piotrowicz J, Zemser M, vd. Trabzon hurması ve elmada diyet lifi toplam fenolik ve minerallerin karşılaştırmalı içeriği. J Agric Food Chem. 2001; 49 : 952–7. [ PubMed ] [ Google Scholar ]
    41. Gorinstein S, Zemser M, Haruenkit R, Chuthakorn R, Grauer F, Martin-Belloso O, vd. Tropikal meyveler ve hurmada toplam polifenollerin ve diyet lifinin karşılaştırmalı içeriği. J Nutr Biochem. 1999; 10 : 367–371. [ PubMed ] [ Google Scholar ]
    42. Gorinstein S, Zemser M, Weitz M, Halevy S, Deutsch J, Tilis K, vd. Hurmada fenoliklerin florometrik analizi. Biosci Biotechnol Biochem. 1994; 58 : 1087–1092. [ Google Scholar ]
    43. Gu H, Li C, Xu Y, Hu W, Chen M, Wan Q. Trabzon hurması hamurundan taninin yapısal özellikleri ve antioksidan aktivitesi. Gıda Res Int. 2008; 41 : 208–17. [ Google Scholar ]
    44. Han J, Kang S, Choue R, Kim H, Leem K, Chung S, vd. Diospyros kaki Laminaria japonica ve Undaria pinnatifida'nın serbest radikal süpürücü etkisi. Fitoterapia. 2002; 73 : 710–2. [ PubMed ] [ Google Scholar ]
    45. Hanasaki Y, Ogawa S, Fukui S. Flavonoidlerin aktif oksijen temizleyici ve antioksidan etkileri arasındaki korelasyon. Ücretsiz Radic Biol Med. 1994; 16 : 845–850. [ PubMed ] [ Google Scholar ]
    46. Harima S, Nakano R, Yamauchi S, Kitano Y, Yamamoto Y, Inaba A, vd. 1-MCP ile büzücü hurma Diospyros kaki Thunb meyvesinin raf ömrünün uzatılması. Postharvest Biol Technol. 2003; 29 : 318–23. [ Google Scholar ]
    47. Hertog MG, Kromhout D, Aravanis C, Blackburn H, Buzina R, Fidanza F, vd. Yedi ülkede yapılan çalışmada flavonoid alımı ve uzun vadeli koroner kalp hastalığı ve kanser riski. Arch Intern Med. 1995; 155 : 381–386. [ PubMed ] [ Google Scholar ]
    48. Hibasami H, Achiwa Y, Fujikawa T, Komiya T. İnsan lenfoid lösemi hücrelerinde programlanmış hücre ölümünün (apoptoz) kateşin bileşikleri tarafından indüklenmesi. Anticancer Res. 1996; 16 : 1943–1946. [ PubMed ] [ Google Scholar ]
    49. Homnava A, Payne J, Koehler P, Eitenmiller R. Provitamin a (alfa-karoten, beta-karoten ve beta-kriptoksantin) ve Japon ve Amerikan hurmalarının askorbik asit içeriği. J Gıda Kalitesi 1990; 13 : 85–95. [ Google Scholar ]
    50. Igual M, Castello ML, Ortola MD, Andres A. Vakum emdirmenin, kesilmiş hurmanın solunum hızı mekanik ve optik özellikleri üzerindeki etkisi. J Gıda Müh. 2008; 86 : 315–23. [ Google Scholar ]
    51. Ikegami A, Akagi T, Potter D, Yamada M, Sato A, Yonemori K, vd. Persimmon Diospyros kaki Thunb'un proantosiyanidin bakımından zengin genç meyvelerinden 1-Cys peroksiredoksin ve antosiyanidin / flavonol 3-O-galaktosiltransferazın moleküler tanımlaması. Planta. 2009; 230 : 841–855. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    52. Ikegami A, Eguchi S, Kitajima A, Inoue K, Yonemori K. Trabzon hurması (Diospyros kaki) meyvesinin proantosiyanidin biyosentezinde rol oynayan genlerin tanımlanması. Plant Sci. 2007; 172 : 1037–47. [ Google Scholar ]
    53. Innami S, Tabata K, Shimizu J, Kusunoki K, Ishida H, Matsuguma M, vd. Jew's mellow (Corchorus), persimmon (Diosphyros kaki) ve tatlı patatesten (Ipomoea batatas poir) kurutulmuş yeşil yaprak tozları, kolesterol içermeyen diyetle beslenen sıçanlarda hepatik kolesterol konsantrasyonunu düşürür ve dışkı safra asidi atılımını artırır. Bitki Gıdaları Hum Nutr. 1998; 52 : 55–65. [ PubMed ] [ Google Scholar ]
    54. Itamura H, Zheng Q, Akaura K. Japon hurmasının sanayi ve araştırma trendi. Açta Horticult. 2005; 685 : 37–44. [ Google Scholar ]
    55. Ittah, Y C02 ile suni olgunlaşma sırasında hurma meyvelerinde (Diospyros kaki L.) şeker içeriği değişiklikleri: bozunma mekanizmalarıyla olası bir bağlantı. Food Chem. 1993; 48 : 25–29. [ Google Scholar ]
    56. Jang I, Jo EK, Bae MS, Lee HJ, Jeon GI, Park E, vd. Trabzon hurması (Diospyros kaki cv. Fuyu) meyvesinin farklı kısımlarının antioksidan ve antijenotoksik aktiviteleri. J Med Plants Res. 2010; 4 : 155–160. [ Google Scholar ]
    57. Jo C, Son, JH, Shin MG, Byun, MW Depolama sırasında hurma (Diospyros kaki L. folium) yaprak ekstresi ve meyan kökü (Glycyrrhiza Uralensis Fischer) kökü ekstraktının renk ve fonksiyonel özellikleri üzerindeki ışınlama etkileri. Radiat Physics Chem. 2003; 67 : 143–8. [ Google Scholar ]
    58. Jung SK, Kim K, Tae K, Kong G, Kim MK. Çiğ sebze ve meyve alımının kadınlar arasında tiroid kanseri riski üzerindeki etkisi: Güney Kore'de bir vaka-kontrol çalışması. Br J Nutr. 2013; 109 : 118–128. [ PubMed ] [ Google Scholar ]
    59. Jung ST, Park YS, Zachwieja Z, Folta M, Barton H, Piotrowicz J, vd. Taze ve kurutulmuş hurmada bazı temel fitokimyasallar ve antioksidan potansiyeli. Int J Food Sci Nutr. 2005; 56 : 105–113. [ PubMed ] [ Google Scholar ]
    60. Jung UJ, Park YB, Kim SR, Choi MS. Trabzon hurması yaprağının eklenmesi, tip 2 diyabetik farelerde hiperglisemi, dislipidemi ve hepatik yağ birikimini iyileştirir. PLoS One. 2012; 7 : e49030. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    61. Kapiszewska M, Soltys E, Visioli F, Cierniak A, Zajac G. Akdeniz bitki özütünün oksidatif DNA hasarına karşı koruyucu yeteneği. Radikal oksijen türlerinin rolü ve polifenol içeriği. J Physiol Pharmacol. 2005; 56 : 183–197. [ PubMed ] [ Google Scholar ]
    62. Kawakami K, Aketa S, Nakanami M, Iizuka S, Hirayama M. Trabzon hurması yapraklarındaki (Diospyros kaki) başlıca suda çözünür polifenoller, proantosiyanidinler ve bunların alfa-amilaz inhibe edici aktiviteleri. Biosci Biotechnol Biochem. 2010; 74 : 1380–1385. [ PubMed ] [ Google Scholar ]
    63. Kawase M, Motohashi N, Satoh K, Sakagami H, Nakashima H, Tani S, vd. Trabzon hurması (Diospyros kaki) kabuğu ekstraktlarının biyolojik aktivitesi. Phytother Res. 2013; 17 : 495–500. [ PubMed ] [ Google Scholar ]
    64. Khanal P, Oh WK, Thuong PT, Cho SD, Choi HS. Diospyros kaki'nin (Trabzon hurması) yapraklarından elde edilen 24-hidroksörsolik asit, AMP ile aktive olan protein kinazın aktivasyonu ile apoptozu indükler. Planta Med. 2010; 76 : 689–693. [ PubMed ] [ Google Scholar ]
    65. Khokhar S, Magnusdottir SGM. Birleşik Krallık'ta yaygın olarak tüketilen çayların toplam fenol, kateşin ve kafein içerikleri. J Agric Food Chem. 2002; 50 : 565–70. [ PubMed ] [ Google Scholar ]
    66. Kiechl S, Willeit J, Egger G, Poewe W, Oberhollenzer F. Vücut demir depoları ve karotis ateroskleroz riski: Bruneck çalışmasından olası sonuçlar. Dolaşım. 1997; 96 : 3300–7. [ PubMed ] [ Google Scholar ]
    67. Kim SH, Cho SS, Simkhada JR, Park SJ, Lee HJ, Kim TS, vd. Diospyros kaki'nin insan lösemi HL-60 hücrelerinin farklılaşması üzerindeki etkileri ve etki mekanizması. Oncol Rep. 2010; 23 : 89–95. [ PubMed ] [ Google Scholar ]
    68. Kim SY, Jeong SM, Kim SJ, Jeon KI, Park E, Park HR, vd. Isıl işlemin hurma (Diospyros kaki L.) kabuğundan elde edilen ekstraktların antioksidatif ve antijenotoksik aktivitesi üzerine etkisi. Biosci Biotechnol Biochem. 2006; 70 : 999–1002. [ PubMed ] [ Google Scholar ]
    69. Kim YJ, Yokozawa T. Proantosiyanidinlerle oksidatif stres ve melanogenezin modülasyonu. Biol Pharm Bull. 2009; 32 : 1155–1159. [ PubMed ] [ Google Scholar ]
    70. Kotani M, Matsumoto M, Fujita A, Higa S, Wang W, Suemura M, vd. Trabzon hurması yaprağı ekstresi ve astragalin, NC / Nga farelerinde dermatit gelişimini ve IgE yükselmesini inhibe eder. J Allergy Clin Immunol. 2000; 106 : 159–166. [ PubMed ] [ Google Scholar ]
    71. Kromhout D, Menotti A, Kesteloot H, Sans S. Diyet ve yaşam tarzı ile koroner kalp hastalığının önlenmesi: ileriye dönük kültürler arası, kohort ve müdahale çalışmalarından kanıtlar. Dolaşım. 2002; 105 : 893–898. [ PubMed ] [ Google Scholar ]
    72. Kumazawa S, Taniguchi M, Suzuki Y, Shimura M, Kwon MS, Nakayama T. Keçiboynuzu kabuklarında polifenollerin antioksidan aktivitesi. J Agric Food Chem. 2002; 50 : 373–7. [ PubMed ] [ Google Scholar ]
    73. Lapshina EA, Sudnikovich EJ, Maksimchik JZ, Zabrodskaya SV, Zavodnik LB, Kubyshin VL, vd. Uzun süreli ASA tedavisine maruz kalan diyabetik sıçanlarda antioksidatif enzim ve glutatyon S-transferaz aktiviteleri. Life Sci. 2006; 79 : 1804–1811. [ PubMed ] [ Google Scholar ]
    74. Laranjinha JA, Almeida LM, Maderia VM. Diyet fenolik asitlerin peroksil radikalleri ile reaktivitesi: düşük yoğunluklu lipoprotein peroksidasyonu üzerine antioksidan aktivite. Biochem Pharmacol. 1994; 48 : 487–94. [ PubMed ] [ Google Scholar ]
    75. Larsson M, Vorrsjö E, Talmud P, Lookene A, Olivecrona G. Apolipoproteinler CI ve C-III, enzimin lipid damlacıklarından yer değiştirmesiyle lipoprotein lipaz aktivitesini inhibe eder. J Biol Chem. 2013; 288 : 33997–34008. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    76. Lee JH, Lee YB, Seo WD, Kang ST, Lim JW, Cho KM. Trabzon hurması suyunun (Diospyros kaki L. cv. Gapjubaekmok) antioksidan aktiviteleri ve besin bileşenlerinin karşılaştırmalı çalışmaları Prev Nutr Food Sci. 2012; 17 : 141–151. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    77. Lee JS, Lee MK, Ha TY, Bok SH, Park HM, Jeong KS, vd. Bütün hurma yaprağı takviyesi, yüksek yağlı diyetle beslenen sıçanlarda lipit profillerini iyileştirir ve vücut ağırlığı artışını bastırır. Food Chem Toxicol. 2006; 44 : 1875–83. [ PubMed ] [ Google Scholar ]
    78. Lee YA, Cho EJ, Tanaka T, Yokozawa T. Diyabete bağlı oksidatif stres ve sindirim enzimlerine karşı persimmondan proantosiyanidinlerin inhibe edici aktiviteleri. J Nutr Sci Vitaminol (Tokyo) 2007; 53 : 287–292. [ PubMed ] [ Google Scholar ]
    79. Lee YA, Cho EJ, Yokozawa T. Tip 2 diyabetli fare modelinde proantosiyanidin preparatlarının hiperlipidemi ve diğer biyobelirteçler üzerindeki etkileri. J Agric Food Chem. 2008; 56 : 7781–7789. [ PubMed ] [ Google Scholar ]
    80. Lee YA, Cho EJ, Yokozawa T. Oligomerik proantosiyanidinler hafızayı geliştirir ve yaşlanma ile hızlandırılmış farelerde vasküler endotel büyüme faktörü reseptör-2'nin fosforilasyonunu arttırır / 8. Br J Nutr. 2010; 103 : 479–489. [ PubMed ] [ Google Scholar ]
    81. Lee YA, Kim YJ, Cho EJ, Yokozawa T. Streptozotosin ile indüklenen diyabetik sıçanlarda proantosiyanidinin oksidatif stres ve inflamasyon üzerindeki iyileştirici etkileri. J Agric Food Chem. 2007; 55 : 9395–400. [ PubMed ] [ Google Scholar ]
    82. Luo Z. 1-metilsiklopropenin hasat sonrası hurma (Diospyros kaki L.) meyvesinin olgunlaşmasına etkisi. LWT Food Sci Technol. 2007; 40 : 285–91. [ Google Scholar ]
    83. Manach C, Scalbert A, Morand C, Rémésy C, Jiménez L. Polifenoller: besin kaynakları ve biyoyararlanım. Ben J Clin Nutr. 2004; 79 : 727–47. [ PubMed ] [ Google Scholar ]
    84. Mashima R, Witting PK, Stocker R. Aterosklerozda oksidanlar ve antioksidanlar. Curr Opin Lipidol. 2001; 12 : 411–418. [ PubMed ] [ Google Scholar ]
    85. Mathews-Roth MM. Eritropoietik pro-toporfiride ve diğer fotosensitivite hastalıklarında karotenoidler. Ann NY Acad Sci. 1993; 691 : 127–138. [ PubMed ] [ Google Scholar ]
    86. Matsumoto K, Watanabe Y, Ohya MA, Yokoyama S. Genç hurma meyveleri, diyetle indüklenen bir murin obezite modelinde plazma lipidlerindeki artışı önler. Biol Pharm Bull. 2006; 29 : 2532–2535. [ PubMed ] [ Google Scholar ]
    87. Matsumoto K, Yokoyama S, Gato N. Genç hurma (Diospyros kaki) meyvesinin safra asidi bağlama aktivitesi ve farelerde hipolipidemik etkisi. Phytother Res. 2010; 24 : 205–210. [ PubMed ] [ Google Scholar ]
    88. Matsumoto K, Yokoyama S, Gato N. C57BL / 6.KOR-ApoEshl farelerinde genç hurma meyvesinin hipolipidemik etkisi. Biosci Biotech Biochem. 2008; 72 : 2651–2659. [ PubMed ] [ Google Scholar ]
    89. Matsuo T, Itoo S. Trabzon hurmasının (Diospyros kaki L.) olgunlaşmamış meyvesinden kaki-taninin kimyasal yapısı Agric Biol Chem. 1978; 42 : 1637–1643. [ Google Scholar ]
    90. Matsuura E, Kobayashi K, Tabuchi M, Lopez LR. Düşük yoğunluklu lipoproteinin oksidatif modifikasyonu ve aterosklerozun immün regülasyonu. Prog Lipid Res. 2006; 45 : 466–486. [ PubMed ] [ Google Scholar ]
    91. Michel TM, Pulschen D, Thome J. Depresif bozukluklarda oksidatif stresin rolü. Curr Pharm Des. 2012; 18 : 5890–5899. [ PubMed ] [ Google Scholar ]
    92. Miller PE, Snyder DC. Fitokimyasallar ve kanser riski: epidemiyolojik kanıtların gözden geçirilmesi. Nutr Clin Uygulaması. 2012; 27 : 599–612. [ PubMed ] [ Google Scholar ]
    93. Ay YJ, Cha YS. Kronik alkolle beslenen sıçanlarda hurma sirkesinin lipit metabolizması ve alkol klirensi üzerindeki etkileri. J Med Food. 2008; 11 : 38–45. [ PubMed ] [ Google Scholar ]
    94. Mure K, Takeshita T, Morioka I, Arita M. Kakisu'nun (hurma sirkesi) plazma antioksidan gücü ve idrar 8-izoprostan seviyesi üzerindeki etkileri. Nihon Eiseigaku Zasshi. 2007; 62 : 32–38. [ PubMed ] [ Google Scholar ]
    95. Nakano R, Inoue S, Kubo Y, Inaba A. Kalikste su stresi kaynaklı etilen, otokatalitik etilen üretimini ve ısıtılmış bir plastik evde yetiştirilen 'Tonewase' hurmasında meyve yumuşamasını tetikler. Postharvest Biol Technol. 2002; 25 : 293–300. [ Google Scholar ]
    96. Ohguchi K, Nakajima C, Oyama M, Iinuma M, Itoh T, Akao Y, vd. Japon hurması kabuğundan (Diospyros kaki 'Fuyu') izole edilen flavonoid glikozitlerin melanin biyosentezi üzerindeki inhibe edici etkileri. Biol Pharm Bull. 2010; 33 : 122–124. [ PubMed ] [ Google Scholar ]
    97. Ouyang P, Bei W, Lai W, Peng W. Diospyros kaki yapraklarından elde edilen flavonun, in vitro olarak doğal düşük yoğunluklu lipoprotein tarafından uyarılan sıçan vasküler düz kas hücreleri proliferasyonu üzerindeki etkileri. Zhong Yao Cai. 2004; 27 : 600–602. [ PubMed ] [ Google Scholar ]
    98. Özen A, Çolak A, Dinçer B, Güner S. Trabzon hurması meyvelerinden bir difenolaz (Diospyros kaki L, Ebenaceae) Food Chem. 2004; 85 : 431–7. [ Google Scholar ]
    99. Park SY, Park SH, Jeon SM, Park YB, Lee SJ, Jeong TS, vd. Rutin ve tanik asit takviyelerinin sıçanlarda kolesterol metabolizmasına etkisi. Nutr Res. 2002; 22 : 293–5. [ Google Scholar ]
    100. Park YS, Jung ST, Kang SG, Delgado-Licon E, Ayala ALM, Tapia MS. Hurmaların (Diospyros kaki L.) kurutulması ve çalışılan biyoaktif bileşiklerde aşağıdaki değişiklikler ve toplam radikal temizleme aktiviteleri. LWT-Food Sci Technol. 2006; 39 : 748–755. [ Google Scholar ]
    101. Paul M, Mehr, AP, Kreutz R. Lokal renin-anjiyotensin sistemlerinin fizyolojisi. Physiol Rev. 2006; 86 : 747–803. [ PubMed ] [ Google Scholar ]
    102. Piretti MV. Diospyros kaki meyvesinin polifenol bileşenleri. Bir inceleme. Fitoterapia. 1991; 1 : 3–13. [ Google Scholar ]
    103. Plumb GW, De Pascual-Teresa S, Santos-Buelga C, Cheynier V, Williamson G. Kateşinlerin ve proantosiyanidinlerin antioksidan özellikleri: polimerizasyon, galoilasyon ve glikosilasyonun etkisi. Ücretsiz Radic Res. 1998; 29 : 351–8. [ PubMed ] [ Google Scholar ]
    104. Prakash P, Krinsky NI, Russell RM. Retinoidler, karotenoidler ve insan meme kanseri hücre kültürleri: Farklı etkilerin gözden geçirilmesi. Nutr Rev. 2000; 58 : 170–176. [ PubMed ] [ Google Scholar ]
    105. Rahman MA, İslam AKMS, Khair A, Bala BK. Polar olmayan gazların hurma meyvelerinin farklı sıcaklıklarda depolanmasına etkisi. Pak J Biol Sci. 2002; 5 : 84–7. [ Google Scholar ]
    106. Ramasubbu N, Ragunath C, Mishra PJ, Thomas LM, Gyémánt G, Kandra L. -2 alt bölgesinde yer alan insan tükürük alfa-amilazı Trp58, enzim aktivitesi için kritiktir. Eur J Biochem. 2004; 271 : 2517–2529. [ PubMed ] [ Google Scholar ]
    107. Remuzzi G, Ruggenenti P. ACE inhibitörlerinin randomize çalışmalarına genel bakış. Lancet. 2006; 368 : 555–556. [ PubMed ] [ Google Scholar ]
    108. Rice-Evans CA, Miller NJ, Paganga J. Fenolik bileşiklerin antioksidan özellikleri. Plant Sci'deki Eğilimler. 1997; 2 : 152–9. [ Google Scholar ]
    109. Robertson RP, Harmon J, Tran PO, Tanaka Y, Takahashi H. Beta hücrelerinde glukoz toksisitesi: tip 2 diyabet, kötü giden iyi radikaller ve glutatyon bağlantısı. Diyabet. 2003; 52 : 581–587. [ PubMed ] [ Google Scholar ]
    110. Roller M, Clune Y, Collins K, Rechkemmer G, Watzl B. Probiyotikler Lactobacillus rhamnosus ve Bifidobacterium lactis ile kombinasyon halinde oligofruktoz ile zenginleştirilmiş prebiyotik inülin tüketimi, polipektomi ve kolon kanseri hastalarında seçilen immün parametreler üzerinde küçük etkilere sahiptir. Br J Nutr. 2007; 97 : 676–684. [ PubMed ] [ Google Scholar ]
    111. Ros E, Hu FB. Bitki tohumlarının tüketimi ve kardiyovasküler sağlık: epidemiyolojik ve klinik deneme kanıtı. Dolaşım. 2013; 128 : 553–565. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    112. Sa YS, Kim SJ, Choi HS. Diospyros kaki L.'nin yapraklarından elde edilen antikoagülan fraksiyonu, antitrombotik aktiviteye sahiptir. Arch Pharm Res. 2005; 28 : 667–674. [ PubMed ] [ Google Scholar ]
    113. Sakanaka S, Tachibana Y, Okada Y. Japon hurması yaprak çayının (kakinoha-cha) ekstrelerinin hazırlanması ve antioksidan özellikleri Food Chem. 2005; 89 : 569–75. [ Google Scholar ]
    114. Sarkar A, Bishayee A, Chatterjee M. Beta-karoten, deneysel hepatokarsinojenezde lipid peroksidasyonunu ve kırmızı kan hücresi zarı protein hasarını önler. Cancer Biochem Biophys. 1995; 15 : 111–125. [ PubMed ] [ Google Scholar ]
    115. Singh BB, Vinjamury SP, Der-Martirosyan C, Kubik E, Mishra LC, Shepard NP, vd. Hiperlipidemi için Ayurvedik ve kollateral bitkisel tedaviler: randomize kontrollü çalışmaların ve yarı deneysel tasarımların sistematik bir incelemesi. Altern Ther Health Med. 2007; 13 : 22–28. [ PubMed ] [ Google Scholar ]
    116. Sultan MT, Butt MS, Anjum FM, Jamil A. Normal ve diyabetik sıçanlarda siyah kimyon fikse ve uçucu yağ takviyesinin miyokardiyal nekroz belirteçleri üzerindeki etkisi. Pak J Nutr. 2009; 8 : 1450–1455. [ Google Scholar ]
    117. Sun L, Zhang J, Lu X, Zhang L, Zhang Y. Trabzon hurması (Diospyros kaki L.) yapraklarından toplam flavonoid ekstraktının antioksidan aktivitesinin değerlendirilmesi. Food Chem Toxicol. 2011; 49 : 2689–2696. [ PubMed ] [ Google Scholar ]
    118. Suzuki T, Someya S, Hu F, Tanokura M. Beş Japon hurmasında (Diospyros kaki) kateşin bileşimlerinin karşılaştırmalı çalışması Food Chem. 2005; 93 : 149–52. [ Google Scholar ]
    119. Takahashi M, Watanabe H, Kikkawa J, Ota M, Watanabe M, Sato Y, vd. Japon hurmasından (Hachiya-kaki) karotenoid ekstraksiyonu, etanol ile süper kritik CO2 ile soyulur. Anal Sci. 2006; 22 : 1441–1447. [ PubMed ] [ Google Scholar ]
    120. Veberic R, Jurhar J, Mikulic-Petkovsek M, Stampar F, Schmitzer V. 11 hurma meyvesi (Diospyros kaki L.) çeşidinde birincil ve ikincil metabolitlerin karşılaştırmalı çalışması Food Chem. 2010; 119 : 477–83. [ Google Scholar ]
    121. Wang H, Leng P, Zhao G, Ji Q. Trabzon hurması için depolama teknolojisi araştırmalarında gelişmeler. J Fruit Sci. 2004; 21 : 164–6. [ Google Scholar ]
    122. Wild S, Roglic G, Green A, Sicree R, King H. Global diyabet prevalansı. Diyabet bakımı. 2004; 27 : 1047–1053. [ PubMed ] [ Google Scholar ]
    123. Woodside JV, Young IS, McKinley MC. Meyve ve sebze alımı ve kardiyovasküler hastalık riski. Proc Nutr Soc. 2013; 72 : 399–406. [ PubMed ] [ Google Scholar ]
    124. Wu PW, Hwang LS. Çözünür hurma taneninin yüksek performanslı jel geçirgenlik kromatografisi ile belirlenmesi. Gıda Res Int. 2002; 35 : 793–800. [ Google Scholar ]
    125. Xiao J, Ni X, Kai G, Chen X. α-amilazı inhibe eden diyet polifenollerinin yapı-aktivite ilişkisi üzerine bir inceleme. Crit Rev Food Sci Nutr. 2013; 53 : 497–506. [ PubMed ] [ Google Scholar ]
    126. Xing N, Chen Y, Mitchell SH, Young CYF. Quercetin, LNCaP prostat kanseri hücrelerinde androjen reseptörünün ekspresyonunu ve işlevini inhibe eder. Karsinojenez. 2001; 22 : 409–14. [ PubMed ] [ Google Scholar ]
    127. Yamada M, Tairab S, Ohtsuki M, Sato A, Iwanamia H, Yakushijia H, et al. Japon ve Çin menşeli Doğu büzücü hurmalar arasında karbondioksit gazı ve etanol buharı işlemleriyle büzülme kolaylığının giderilmesindeki çeşitli farklılıklar. Sci Horticulturae. 2002; 94 : 63–72. [ Google Scholar ]
    128. Yokozawa T, Kim YA, Kim HY, Lee YA, Nonaka G. Trabzon hurmasının koruyucu etkisi, LLC-PK1 hücrelerinde yüksek glikoz kaynaklı oksidatif strese karşı polifenolü soyar. Food Chem Toxicol. 2007; 45 : 1979–87. [ PubMed ] [ Google Scholar ]
    129. Yokozawa T, Park CH, Noh JS, Roh SS. Oksidatif stresle ilişkili yaşlanma sürecinde hurma meyvelerinin bir özünden türetilen oligomerik proantosiyanidinlerin rolü. Moleküller. 2014; 19 : 6707–6726. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    130. Yonemitsu S, Nishimura H, Shintani M, Inoue R, Yamamoto Y, Masuzaki H, vd. Troglitazon, L6 miyotüplerinde GLUT4 translokasyonunu indükler. Diyabet. 2001; 50 : 1093–1101. [ PubMed ] [ Google Scholar ]
    131. Zhao M, Yang B, Wang J, Liu Y, Yu L, Jiang Y. Litchi (Litchi chinensis Sonn) perikarpından ekstrakte edilen flavonoidlerin immünomodülatör ve antikanser aktiviteleri. Int Immunopharmacol. 2007; 7 : 162–166. [ PubMed ] [ Google Scholar ]
    132. Zheng GH, Sugiura A. Trabzon hurması (Diospyros kaki) meyvelerinin büyümesi ve olgunlaşmasındaki invertaz aktivitesiyle ilişkili olarak şeker bileşimindeki değişiklikler. J Jap Soc Horticul Sci. 1990; 59 : 281–287. [ Google Scholar ]
    133. Zheng QL, Nakatsuka A, Itamura H. 'Saijo' persimmon'unda yara kaynaklı etilen sentezinde negatif geri besleme düzenlemesinin katılımı. J Agric Food Chem. 2006; 54 : 5875–5879. [ PubMed ] [ Google Scholar ]
    134. Zheng, QL, Nakatsuka A, Taira S, Itamura H. Trabzon hurması meyvesindeki 1-aminosiklopropan-1-karboksilik asit (ACC) sentaz ve ACC oksidazın enzimatik aktiviteleri ve gen ekspresyonu. Postharvest Biol Technol. 2005; 37 : 190–286. [ Google Scholar ]
    135. Zhou C, Sheng Y, Zhao D, Wang Z, Tao J. Farklı çeşitler arasında hurma meyvesinin etindeki oleanolik ve ursolik asit varyasyonu. Moleküller. 2010; 15 : 6580–6587. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
    136. Ziel FH, Venkatesan N, Davidson MB. Glikoz taşınması, normal ve STZ ile indüklenen diyabetik sıçanlarda iskelet kası glikoz metabolizması için hız sınırlayıcıdır. Diyabet. 1988; 37 : 885–890. [ PubMed ] [ Google Scholar ]
    137. Zou B, Li CM, Chen JY, Dong XQ, Zhang Y, Du J. Yüksek moleküler ağırlıklı hurma tanen, yüksek kolesterollü diyetle beslenen sıçanlarda güçlü bir hipolipidemiktir. Gıda Res Int. 2012; 48 : 970–977. [ Google Scholar ]

    Yorum yap


    • #3
      Persimmon (Diospyros kaki) fruit: hidden phytochemicals and health claims

      Masood Sadiq Butt,1 M. Tauseef Sultan,2 Mahwish Aziz,1 Ambreen Naz,*,3 Waqas Ahmed,1 Naresh Kumar,4 and Muhammad Imran5
      Author information Article notes Copyright and License information Disclaimer
      This article has been cited by other articles in PMC.
      Go to: Abstract

      Currently, nutrition and health linkages focused on emerging strategy of diet based regimen to combat various physiological threats including cardiovascular disorders, oxidative stress, diabetes mellitus, etc. In this context, consumption of fruits and vegetables is gaining considerable importance as safeguard to maintain human health. Likewise, their phytochemicals and bioactive molecules are also becoming popular as promising demulcent against various ailments. The current review is an effort to sum up information regarding persimmon fruit with special reference to its phytochemistry and associated health claims. Accordingly, the role of its certain bioactive molecules like proanthocyanidin, carotenoids, tannins, flavonoids, anthocyanidin, catechin, etc. is highlighted. Owing to rich phytochemistry, persimmon and its products are considered effective in mitigating oxidative damage induced by reactive oxygen species (ROS). The antioxidant potential is too responsible for anti-malignant and anti-melanogenic perspectives of persimmon functional ingredients. Additionally, they are effectual in soothing lifestyle related disparities e.g. cardiovascular disorders and diabetes mellitus. There are proven facts that pharmacological application of persimmon or its functional ingredients like proanthocyanidin may helps against hyperlipidemia and hyperglycemia. Nevertheless, astringent taste and diospyrobezoars formation are creating lacuna to prop up its vitality. In toto, persimmon and its components hold potential as one of effective modules in diet based therapy; however, integrated research and meta-analysis are still required to enhance meticulousness.

      Keywords: persimmon, phytochemicals, astringency, tannins, cardiovascular disorders, oxidative stress, diabetes mellitus
      Go to: Introduction

      Fruits and vegetables are important component of human diet and play important role in maintain the human health. The health promoting potentials associated with their consumption are mainly due to presence of bioactive components and these phytochemicals are distinct bioactive molecules widely acknowledged for their beneficial roles in human physiology (Manach et al., 2004[83]). Number of plants gained popularity as wholesome food entities but still many horizons demand researchers attention. Amongst, persimmon (Diospyros kaki L.) is one of these nutritious fruits bestowed with strong antioxidant activity (Jung et al., 2005[59]; Igual et al., 2008[50]).

      Persimmon is fleshy fibrous tropical, deciduous fruit belonging to Ebenaceae family. It is commonly cultivated in warm regions of the world including China, Korea, Japan, Brazil, Turkey, and Italy (Itamura et al., 2005[54]; Yokozawa et al., 2007[128]). In 2007, the global production of persimmon reached over 3.3 million tons, with 70.0 % from China, 10.0 % from Korea and 7.0 % from Japan. The persimmon is not so popular in European communities but its demand is increasing owing to consumer's awareness regarding its hidden health promoting potential. Mediterranean region is also suitable for persimmon production that has reached up to 110,000 tons (Jung et al., 2005[59]; Luo, 2007[82]; Bubba et al., 2009[18]).

      Generally, over 400 species of persimmon are planted globally. Among these, Diospyros kaki, Diospyros virginiana, Diospyros oleifera, and Diospyros lotus (Bibi et al., 2007[16]) are of significant importance. It is interesting for the readers that D. kaki (Japanese persimmon) is the most promising specie (Rahman et al., 2002[105]; Zheng et al., 2006[133]). The popular varieties grown in Japan and their respective characteristics are discussed in Table 1(Tab. 1) (Reference in Table 1: Suzuki et al., 2005[118]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-t-001.jpg
      Table 1
      Characteristics of commercially renowned cultivars (Courtesy: Suzuki et al., 2005)
      In some Asian cultures, consumers are aware about the health claims related to persimmon and its functional ingredients. The rich phytochemistry of persimmon opened new avenues of research in diet based regimen to cure various ailments. The health promoting potential of persimmon includes its effectiveness against free-radical production, hypercholesterolemia, diabetes mellitus, cancer, dermal disorders, hypertension, etc. This review is an attempt to elucidate the phytochemistry of persimmon and importance of its bioactive molecules in curing various health disparities.

      Go to: Botanical History and Composition

      Being climacteric, persimmon ripening is regulated by ethylene. During climacteric phase, rapid softening occurs resulting jelly-like flesh thus renders persimmon unmarketable within couple of days. Unlike other climacterics, persimmon crop harvested at commercial maturity, produces less ethylene production (below 1.0 nl g-1 h-1 even at peak production), than that harvested at early mature stage releases higher amounts of ethylene i.e. above 50 nl g-1 h-1 (Nakano et al., 2002[95]; Harima et al., 2003[46]). The eating quality of persimmon is considered best at the end of the pre-climacteric stage owing to presence of maximum sugars and desired orange color. It is for further info that fruit color is developed just before onset of the ethylene induced respiration (Zheng et al., 2005[134]; Igual et al., 2008[50]; Arnal, et al., 2008[7]). The botanical classification of persimmon fruits is described in Table 2(Tab. 2).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-t-002.jpg
      Open in a separate window
      Table 2
      Botanical classification
      On the basis of extent of astringency, persimmon is divided into astringent (Yamada et al., 2002[127]; Luo, 2007[82]) and non-astringent types (Asgar et al., 2003[8]; Harima et al., 2003[46]; Suzuki et al., 2005[118]). Characteristics of commercially popular cultivars are already been described in Table 1(Tab. 1) (Reference in Table 1: Suzuki et al., 2005[118]). Persimmon is prominent for its nutrition (Achiwa et al., 1997[1]) comprising 80.3 % water, 0.58 % protein, 0.19 % total lipids, 18.6 % total carbohydrates and some minerals (magnesium, iron, zinc, copper, manganese, etc.) and up to 1.48 g and 7.5 mg total dietary fiber, and ascorbic acid respectively (Ozen et al., 2004[98]; Ercisli et al., 2007[31]). Some of the research studies showed that persimmon also contributes in calcium and potassium availability. Sugar content (12.5 g/100 g) are higher in persimmon than other extensively consumed fruits such as apple, peach, pear and orange (Piretti, 1991[102]). Among sugars, sucrose and its monomers (glucose & fructose) are bountiful (Zheng and Sugiura, 1990[132]; Ittah, 1993[55]). The nutritional composition of persimmon fruits (raw and dried) is elucidated in Table 3(Tab. 3).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-t-003.jpg
      Table 3
      Nutritional value of persimmons (Value per 100 grams)
      Go to: Phytochemicals Profile

      The intake of phytochemicals is dependent on the consumption of fruits, vegetables, tea etc. (Xing et al., 2001[126]; Miller and Snyder, 2012[92]). These food commodities provide shield against various physiological threats due to the presence of antioxidants i.e. polyphenol, carotenoids, tocopherols (Sakanaka et al., 2005[113]). However, it is important to establish the scientific rationale to defend their use in food chain, as potential nutritionally active ingredients (Dillard and German, 2000[29]). The phytochemicals present in persimmon and their importance is described herein.

      In persimmon leaves and fruits, some particular components are prevalent e.g. proanthocyanidins (Jung et al., 2005[59]; Suzuki et al., 2005[118]), flavonoid oligomers, tannins, phenolic acids and catechin etc. (Lee et al., 2012[76]; Jo et al., 2003[57]). Carotenoids and tannins (Homnava et al., 1990[49]; Yokozawa et al., 2007[128]) are significant fractions (Figure 1(Fig. 1); Reference in Figure 1: Lee et al., 2012[76]). Nonetheless, dry persimmon residue comprises of 0.16-0.25 g / 100 g polyphenols, 0.002g / 100 g carotenoids and 0.64-1.3 g/ 100 g proteins (Jung et al., 2005[59]). Earlier, Gorinstein et al. (2001[40]) examined the major phenolic contents of persimmon i.e. epicatechin, ferulic acid, gallic acid, protocatechuic acid, vanillic acid, and p-coumaric acid. The beneficial effect of dried persimmon leaves might be due to the presence of phenolic compounds (1.15 g/100g) and fiber (63.48 g/ 100g) contents (Lee et al., 2006[77]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-g-001.jpg
      Figure 1
      Chemical structures of phenolic acids (1~9) and catechin (10~16). 1: gallic acid, 2: protocatechuic acid, 3: tannic acid, 4: p-hydroxylbenzoic acid, 5: vanillic acid, 6: chlorogenic acid, 7: caffeic acid, 8: p-coumaric acid, 9: ferulic acid, 10: epigallocatechin, 11: catechin, 12: epicatechin, 13: epigallocatechin gallate, 14: gallocatechin gallate, 15: epicatechin gallate, 16: catechin gallate
      (Courtesy: Lee et al., 2012) Comparison of chemical analysis of fresh and processed persimmon fruit

      Fresh and dried persimmons are important nutritional product, which have high content of sugars, as glucose and fructose as a source of energy. The important parameters for determination the quality of fresh and dried persimmons are content of total dry matter and moisture content respectively. It is worth to mention that, the total solids have importance in the dehydration process. Most of the dry matter goes to simple sugars, glucose and fructose, as the most represented in persimmon fruits. According to Fennema (1977[32]), ascorbic acid is considered as an index of nutrient quality during processing and storage of foods, and that's why we examined the content of vitamin C in fresh, frozen-fresh and in all variant of pre-treated dried persimmon sheets. The content of vitamin C in fresh persimmon fruit was in the range on 85.63 - 102.47 mg / 100 g or 460.872 - 541.24 mg / 100 g on dry weight basis. In fresh-frozen persimmon fruit the content of vitamin C was in the range on 103.78 - 112.68 mg / 100 g or 509.225 - 545.137 mg / 100 g on dry weight basis. Generally, persimmon fruit is a good source of ascorbic acid (vitamin C) and also for carotene (pro-vitamin A) sugar, crude fiber and minerals, especially potassium. The contents of all analyzed parameters were higher in fresh-frozen fruit compared to fresh persimmon fruits when the mostly of analyzed parameters were found that had higher content in dried persimmon fruit sheets that were processed from fresh-frozen fruit, the content of glucose and fructose mostly increased in persimmon fruit sheets pre-treated with K2S2O5 where the results were in the range 9.93 - 10.28 % and 8.61 - 8.91 % respectively. Major types of phytochemical in Persimmons Fruit

      Carotenoids

      Carotenoids are pigmented compounds abundant in fruits and vegetables have yellow, orange and red color. They usually exist as α, β and γ-forms with specific biological activities. Persimmon is rich in carotenoids especially β-carotenes that can be converted to β-cryptoxanthin. Both these component possesses substantial biological activities (Sarkar et al., 1995[114]; Kumazawa et al., 2002[72]). Various scientists (Sakanaka et al., 2005[113]; Veberic et al., 2010[120]) already reported that β-carotenes are predominant in the persimmon fruit followed by β-cryptoxanthin and α-carotenes.

      Tannins

      Tannins are one of the important categories of bioactive molecules present in the persimmon meat (Ahn et al., 2002[2]) with molecular weight up to 1.12 × 10⁴da (Bae et al., 2000[10]; Wu and Hwang, 2002[124]; Jo et al., 2003[57]). They contain gallic acid residues linked with glucose via glycosidic bonds. Considering the chemical properties, tannins can be split up into two broader groups i.e. hydrolyzable and non-hydrolyzable. However, on the basis of structural configurations, there are three major categories i.e. complex, condensed, and hydrolyzable tannins. Regarding astringency, about 2 % of condensed soluble tannins are observed in particular varieties due to the formation of salivary protein complexes (Manach et al., 2004[83]; Bibi et al., 2007[16]; Yokozawa et al., 2007[128]; Gu et al., 2008[43]). On eating an astringent persimmon, the tannin cells present in the fruit are crushed and soluble tannins are released thus resulting astringent sensation (Asgar et al., 2003[8]). However, this hedonic lacuna can be masked through controlled reaction with protein. Conversion of soluble tannins into insoluble form results in disappearance of astringency (Igual et al., 2008[50]). Additionally, flavano-ellagitannin (molecule of flavan-3-ol coupled with hydrolyzable tannin moiety through carbon-carbon linkage) and procyanidino-ellagitannin (proanthocyanidins and ellagitannins) are also substantial phytochemical moieties present in persimmon. Previously, some scientists attempted to identify the degraded tannin products. For the purpose, persimmon tannins were deposited with K2HPO4 and reactions were initiated using benzyl mercaptan. Their results indicated that there are four important components i.e. gallo-catechin, catechin, catechin-gallate and gallocatechin-gallate. The structures of these components are portrayed in Figure 2(Fig. 2) (References in Figure 2: Matsuo and Itoo, 1978[89]; Ozen et al., 2004[98]; Gu et al., 2008[43]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-g-002.jpg
      Figure 2
      Chemical structures of persimmon tannin and related catechin
      (Courtesy: Matsuo and Itoo, 1978; Ozen et al., 2004; Gu et al., 2008)

      Phenolic compounds

      The phenolics present in persimmon are further categorized into water soluble/ extractable [EPP] and water insoluble/non-extractable [NEPP]. The absorption patterns of both these categories differ from each other as EPPs are directly absorbed from the digestive tract. In contrary, NEPPs are not absorbed in the intestine and wasted in feces (Barry et al., 1986[12]; Bravo et al., 1992[17]). The total polyphenols are observed to be 1.45 mg / 100 g whilst gallic acid contents 190.2-252.2 µg / 100 g in fresh persimmon (Sakanaka et al., 2005[113]). Recently, it has been observed that predominant polyphenols in fresh leaves are water-soluble, and the contents reached a maximum (2.40 % w/w) in June, afterwards gradually decreases (Kawakami et al., 2010[62]). The flavonoid subclass of phenols includes minor flavonoids (flavanones and dihydroflavonols), proanthocyanidins, flavones and flavonols. Some of these flavonoids are present in persimmon such as proanthocyanidins and flavanols (Yokozawa et al., 2007[128]). Moreover, anthocyanidins are pigmented aglycones of anthocyanins usually water-soluble including pelargonidin, cyanidin, paeonidin, delphinidin, glucopyranosides, petunidin, and malvidin (Gondo et al., 1999[37]; Ikegami et al., 2009[51]; Dembitsky et al., 2011[26]). Likewise, a new phenolic metabolite, 4, 8-dihydroxy-6-methyl-1-naphthalenyl 6-O-β-D xylopyranosyl- β-D glucopyranoside (Figure 3(Fig. 3)) was also extracted from persimmon (Gondo et al., 1999[37]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-g-003.jpg
      Open in a separate window
      Figure 3
      Novel phenolic compound 4,8-dihydroxy-6-methyl-1-naphthalenyl 6-O-β-D xylopyranosyl-β-D glucopyranoside was isolated from Diospyros kaki. (Courtesy: Gondo et al., 1999)
      Proanthocyanidins (PAs)

      These components accumulate in enormous amount in persimmon fruit during early development stages. They are secondary metabolites providing safeguard against various problems including environmental stress (Akagi et al., 2010[3]). Biochemically, they are colorless polymers (Plumb et al., 1998[103]; Yokozawa et al., 2007[128]) formed after condensation of flavan 3-ol units (Dixon et al., 2005[30]). Ikegami et al. (2009[51]) identified the catalytic and regulatory mechanisms of phenylpropanoid metabolism and elaborated that PAs usually consisting of Xavan-3-ol units are formed that also include the bioactive moieties like xavonols and glycosylated anthocyanidins (Figure 4(Fig. 4); Reference in Figure 4: Ikegami et al., 2009[51]). They comprised of two to many units of catechin with molecular weight of 1.38 × 10⁴ Da (Ikegami et al., 2007[52]). PAs are present in higher amounts in astringent (A)-type fruits even after they reached full maturity. In comparison, non-astringent (NA)-type fruits lose these functional ingredients before maturation (Ikegami et al., 2009[51]). In recent years, more attention has been paid to PAs and their monomers because of associated health claims. They are also effective in providing bitter mouth feel & color and of course effect on consumption too (Lee et al., 2008[79]; Zhao et al., 2007[131]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-g-004.jpg
      Figure 4
      Chemical structures of Xavonoid aglycones relevant to this study. Flavan-3-ols are monomers of proanthocyanidins (PAs), whereas anthocyanidins are aglycones of anthocyanins, which contain sugar moieties attached to various hydroxyl groups at A, B, and C rings (Courtesy: Ikegami et al., 2009)
      Catechins

      These belong to group of bioactive molecules that provide protection against various ailments (Suzuki et al., 2005[118]). They are mostly present in grapes, bananas, berries, cocoa and green tea (Khokhar and Magnusdotir, 2002[65]). In persimmon, soluble tannins consist of catechin (Yokozawa et al., 2007[128]), catechin-3-gallat, galocatechin and galocatechin-3-gallat (Akyidiz et al., 2004[5]). They further contain substantial amounts of gallic acid esters, for instance, epicatechin gallate and epigallocatechin gallate (Wu and Hwang, 2002[124]; Suzuki et al., 2005[118]; Gu et al., 2008[43]). The catechins contents are higher in astringent persimmons than that of non-astringent cultivars (Suzuki et al., 2005[118]).

      Oleanolic acid (OA) and ursolic acid (UA) are also important bioactive components of persimmon that varied from traces to 88.57 and traces and 27.64 μg/g FW, respectively (Zhou et al., 2010[135]). Furthermore, dietary fiber is present approximately 1.20-1.76 % whilst soluble fiber accounts for 0.52-0.92 %. The heating/blanching of persimmon's peels at 50 °C can yield better quality dietary fiber powder and resultant product holds several food applications for the preparation of fiber-fortified foods (Akter et al., 2010[4]). In a research study, Chen et al. (1999[22]) isolated novel 18, 19-secoursane triterpenoids, kakisaponin B (1) and kakisaponin C (2), an ursane type 28-nortriterpene, kakidiol and known triterpenoid rosamultin from the leaves of Diospyros kaki. It is interesting to express that persimmon peel contains large amount of polyphenolic compounds that are necessary to protect the inner fleshy mass (Kim et al., 2006)[68].

      Go to: Health Claims

      Persimmon leaves have beneficial effects against oxidative stress, hypertension, diabetes mellitus and its complications, and atherosclerosis (Kotani et al., 2000[70]; Wang et al., 2004[121]). The bioactive components present in it especially carotenoids and tannin are helpful in quenching free radicals, decreasing cardiovascular risk factors (blood pressure & cholesterol), and reducing the risks of diabetes mellitus along with effectiveness against cancer insurgence (Park et al., 2002[99]; Lee et al., 2006[77]).

      The tannins present in persimmon are eventually responsible for curing physiological threats. They possess antibacterial (Kawase et al., 2003[63]), anti-allergic (Kotani et al., 2000[70]), free radicals scavenging (Sakanaka et al., 2005[113]), lowering blood pressure (Jo et al., 2003[57]), anticancer and antioxidant activities (Gali et al., 1992[34]). The antioxidant activities of tannin are due to presence of nucleophiles moieties (Laranjinha et al., 1994[74]; Ahn et al., 2002[2]) along with some antimutagenic properties (Achiwa et al., 1997[1]) through inhibition of nitrogen reactive compounds. They are also effective in reducing the incidence of stroke (Wu and Hwang, 2002[124]; Jung et al., 2005[59]) and hypertensive disorders (Sakanaka et al., 2005[113]). Similarly, flavonoids obstruct the activity of angiotensin-converting enzyme that elevates the blood pressure, and inhibit cyclooxygenase that forms prostaglandins. Some in vitro studies have depicted inhibitory actions of flavonoids in prevention of platelet aggregation, and thrombosis formation. According to survey conducted in USA, inverse relationship exists between persimmon consumption and coronary heart disease (Hertog et al., 1995[47]; Lee et al., 2006[77]). The carotenoids and catechins also hold anticancer perspectives against various cancer cell lines (Achiwa et al., 1997[1]; Prakash et al., 2000[104]). Anthocyanidins resembles to other flavonoids as execute antioxidative activities in vivo and in vitro (Rice-Evans et al., 1997[108]) as well as anti-mutagenic properties in vivo. Additionally, persimmon fruit possesses hypocholesterolemic and antioxidant potential (Yokozawa et al., 2007[128]; Gu et al., 2008[43]; Sun et al., 2011[117]; Gato et al., 2013[35]). The detailed health claims associated with persimmon are described herein and some highlights are also being placed in Table 4(Tab. 4) (References in Table 4: Carotenoids: Mathews-Roth, 1993[85]; Gaziano and Hennekens, 1993[36]; Tannin: Wu and Hwang, 2002[124]; Kotani et al., 2000[70]; Sakanaka et al., 2005[113]; Gali et al., 1992[34]; Achiwa et al., 1997[1]; Flavanols: Gondo et al., 1999[37]; Suzuki et al., 2005[118]; Rice-Evans et al., 1997[108]; Anthocyanidins: Han et al., 2002[44]; Jung et al., 2005[59]; Yokozawa et al., 2007[128]; Gorinstein et al., 1998[38]; Gu et al., 2008[43]).
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-t-004.jpg
      Table 4
      Constituents of persimmon that have a positive impact on human health Coronary Care

      In the developed societies, coronary heart diseases (CHD) are major reason for human morbidity and mortality. Several researchers attempted to identify major risk factors for cardiovascular health ailments. In this regard, accumulated evidences suggested that atherosclerosis, imbalance lipid profile, hypertension, and high blood pressure are major causative agents. Moreover, apolipoproteins A-I, B, CI and CIII are also important determinants (Larsson et al., 2013[75]; Antman and Jessup, 2014[6]). Moreover, free radicals can initiate the oxidation of low density lipoproteins (LDL) is another risk factor responsible for onset of atherosclerosis (Aviram, 1993[9]; Chen et al., 2003[21]; Matsuura et al., 2006[90]). The oxidation of LDL is closely linked with accumulations of lipids in the arteries thus enhancing the risk of atherosclerosis (Gorinstein et al., 2000[39]; Mashima et al., 2001[84]; Chen et al., 2003[21]). In the last couple of decades, nutritionists and dietitians focused on development of such dietary strategies that include the utilization of antioxidants rich sources in order to reduce the risk of cardiovascular disorders. Therefore, diets rich in these natural antioxidants are in demand (Kromhout et al., 2002[71]; Park et al., 2006[100]).

      The consumption of higher amounts of fruits and vegetables is responsible for are is associated with lower concentrations of total and low-density lipoprotein cholesterol and with the risk of CVD per se in a dose-response manner (Hertog et al., 1995[47]; Dauchet et al., 2009[25]; Baldrick et al., 2011[11]; Ros et al., 2013[111]; Woodside et al., 2013[123]). Persimmon is one of nutritious entities that hold hypocholesterolemic effects. The reasons include presence of bioactive compounds that possess the plasma lipid lowering and antioxidant properties (Gorinstein et al., 2000[39]; Kim et al., 2009[69]). The bioactivity of persimmon is associated with its water-soluble dietary fibers, minerals, trace elements and phenolics (Hertog et al., 1995[47]). Dietary fiber is present in persimmon in the amounts of 1.20-1.76 % and soluble fiber accounts for 0.52-0.92 %. Dietary fiber holds well defined effects on the lipid metabolism thus persimmon can help in meeting the recommended dietary allowance of dietary fiber i.e. 30-45 g (Roller et al., 2007[110]). Along with dietary fibers, minerals and essential trace elements present in persimmon fruits can prevent coronary atherosclerosis and its complications (Baxter et al., 1996[14]; Kiechl et al., 1997[66]).

      Supplementation of persimmon can improve the plasma lipid metabolism and total antioxidant activity (Gorinstein et al., 1998[38]). Number of scientific investigations provided evidences that the whole persimmon or its parts hold lipid lowering effects in hypercholesterolemic rats. Persimmon leaf powder improved plasma and hepatic lipid levels profile partly via increased fecal lipids excretion (Jung et al., 2012[60]). These beneficial effects may be due to the properties of its phenolic compounds (1.15 g / 100 g) and high fiber (63.48 g / 100 g) content (Innami et al., 1998[53]; Gorinstein et al., 1999[38]). In another study, Lee et al. (2006[77]) supplementation powdered whole persimmon leaf (5 %) and observed that supplementation results in lowering of blood cholesterol and triglyceride, while increased ratio of HDL-C/total-C was also observed. In another study, Matsumoto et al. (2006[86]) supplemented diet with young persimmon fruit (10 %) that reslted in similar results i.e. lowering of total & LDL cholesterol and triglyceride. They reported that the improved lipid profile might be due to increased expression of cholesterol 7 alpha-hydroxylase (CYP7A1) gene's expression. CYP7A1 regulates bile acid synthesis thus holds imperative role in balancing cholesterol homeostasis. As mentioned earlier, higher amounts of LDL are also harmful for human health due to their sucesptibility to oxidation that can further lead to an inflammatory burst resulting in proliferation of endothelial vascular cell to arteries thus leading to the menace of atherosclerosis (Singh et al., 2007[115]). The persimmon and its bioactive molecules like flavone can inhibit proliferation of rat vascular smooth muscle cells exposed to high levels of LDL. They may exert vascular protection by inhibiting vascular smooth muscle cell growth associated with hypercholesterolemia (Ouyang et al., 2004[97]). Later, Matsumoto et al. (2008[88]) conducted studies to check the influence of young persimmon fruit (YP) at 5 % for 10 weeks. YP significantly lowered plasma chylomicron, very low-density lipoprotein (VLDL) and LDL cholesterols, and triglyceride. Additionally, the lipid lowering response of dietary persimmon (7.0 %) was accompanied by an elevation of fecal bile acid excretion and eventually led the hepatic cholesterol and triglyceride values to become normal (Lee et al., 2006[77]). The persimmon-vinegar is traditional fermented product and is used in traditional medicines and cuisine application. However, persimmon-vinegar (2 mL / kg of body weight) holds the potential to significantly decrease the serum triglyceride & cholesterol along with reducing the liver cholesterol (Moon and Cha, 2008[93]).

      In some Asian countries, persimmon leaves are used in tea formulations to cure hypertension. The clinical trials revealed that Renin angiotensin system (RAS) and angiotensin converting enzyme (ACE) are important targets to control or manage the hypertension. Sa et al. (2005[112]) separated the anticoagulant fraction from leaves of persimmon. They reported that extraction fraction delayed thrombin time (TT), activated partial thromboplastin time (APTT), and prothrombin time (PT). The effects could be due to presence of astragalin that has been reported to suppress ACE activity (Paul et al., 2006[101]; Cho et al., 2014[24]). The importance of ACE inhibitors in the chronic treatment of various cardiovascular diseases is now well established (Remuzzi and Ruggenenti, 2006[107]; Lee et al., 2007[78]) and several ACE inhibitors are in the market. Later, Matsumoto et al. (2010[87]) confirmed hypolipidemic effects & bile acid-binding properties of persimmon. They were of the view that persimmon fruits enhanced the bile acid excretion through feces. The excretion of bile acids is closely linked with reduced concentration of lipids in liver and blood. The mechanism of action remained centered around up-regulation of expression of the sterol regulatory element-binding protein-2 gene, 7α-hydroxylase, and the low-density lipoprotein receptor. The effectiveness of dietary persimmon prevented the incidence of stroke due to the radical scavenging action and inhibition of lipid peroxidation (Ahn et al., 2002[2]).

      In the nutshell, the cholesterol lowering effects of persimmon and its products are due to decreased cholesterol absorption, cholesterol & fatty acids synthesis. Indeed, phenolic compounds and dietary fiber are the main constituents responsible for its cardioprotective effects. Antioxidant potential and protection against DNA damage

      The process of oxidation is essential in vitality of life coupled with production of free radicals. A natural balance exists between the production of reactive oxygen species (ROS) and the endogenous antioxidant defense system. These reactive free radicals results in induction of oxidative stress that can damage the cell bound structures and some essential components e.g. proteins and DNA. However, the imbalance can be overcome through supplementation of antioxidants. In this regard, polyphenols, carotenoids, flavonoids, tocopherols, anthocyanins, and tannins are of considerable importance (Ahn et al., 2002[2]; Lee et al., 2006[77]; Butt et al., 2008[19]; Gu et al., 2008[43]).

      Persimmon is naturally bestowed with bioactive molecules including phenolic compounds such as proanthocyanidins, tannins, catechins (Suzuki et al., 2005[118]), carotenoids, sinapine, leucoanthocyanidin, catechin, kaempferol, quercetin, etc. (Park et al., 2006[100]). Most of these bioactive components scavenge free radicals, bind metals, and inhibit the lipid peroxidation. The condensed tannins and flavonoids also contributes towards antioxidant potential of persimmon thus can be considered as effective agents to prevent various lifestyle related disorders (Gali et al., 1992[34]; Gorinstein et al., 1994[42]; Lee et al., 2006[77]). Persimmon also contains carotenoids, polyphenols, and ascorbic acid that have antioxidant properties (Yokozawa et al., 2007[128]) and most of them can play protective roles against oxidative stress-related diseases (Homnava et al., 1990[49]; Suzuki et al., 2005[118]; Bubba et al., 2009[18]). Proanthocyanidins (PAs) present in persimmon are also considered as potent antioxidants thus can be an important factor for reducing oxidative stress induced ailments. However, their efficacy for medicinal purposes needs further elaborations. In one study, oligomer and polymeric PAs suppressed oxidative stress involving the mechanism like scavenging free radicals (oxygen and nitrogen reactive species) and lipid peroxidation inhibition (Kim and Yokozawa, 2009[69]). Additionally, PAs had a strong inhibitory effect on the murine tyrosinase and melanin synthesis that could be again due to suppression of oxidative stress (Kim et al., 2010[67]).

      The scientists tested the antioxidant and persimmon and it bioactive through various in vitro and in vivo assays. In one such study, Chen et al. (2008[23]) observed the radical scavenging activities against ABTS and DPPH radicals of the Mopan persimmon i..e 23.575 and 22.597 microm trolox eq/g f.w., respectively. The proanthocyanidin supports the protective potential oxidative damage under aging process (Lee et al., 2008[79]). Later, Lee et al. (201[80]) studied and reported t he positive aspects of the oral administration of PAs in spatial and object recognition impairment in Senescence-accelerated mouse prone/8 (SAMP8). The positive impact of persimmon in providing protection against memory impairment with aging is due to presence of oligomeric proanthocyanidins (Yokozawa et al., 2014[129]). Previously, it was reported that phytochemical rich fractions (acetone-extract) suppresses the tyrosinase expression thus inhibiting melanin biosynthesis in mouse B16 melanoma cells (Ohguchi et al., 2010[96]). Consequently, extracts from persimmon leaves can be considered important in natural skin care owing to their antioxidant perspectives (Mure et al., 2007[94]). Persimmon preventive role against cancer insurgence and DNA damage

      Several researchers across the globe attempted to provide evidences regarding anticancer perspectives of persimmon and its bioactive components (Jung et al., 2013[58]). In this context, Khanal et al. (2010[64]) studied the anticancer properties of 24-hydroxyursolic acid. They reported that selected compound inhibited cell proliferation through activation of AMP-activated protein kinase (AMPK) pathway in colon cancer (HT-29 cells) along with inhibiting cyclooxygenase (COX-2) expression, inducing apoptosis by activation of poly (ADP-ribose) polymerase (PARP), caspase-3, and phosphorylation of p53 at Ser15. In addition, 24-hydroxyursolic acid blocked the EGF-induced extracellular signal-regulated kinase (ERK) phosphorylation. Recently, Kim et al. (2010[67]) investigated the effect of an acetone extract of D. kaki leaves (KV-1) on HL-60 cell differentiation that indicated that persimmon leaves has the ability to enhance HL-60 cell differentiation and suggest that it may be useful in blood cancer (acute promyelocytic leukemia) therapy. The mode of action includes inhibition of protein kinase C (PKC) and ERK pathways. The extracts of persimmon prevented H2O2-induced DNA damage to human peripheral lymphocytes (Kim et al., 2006[68]). Previously, Bei et al. (2005[15]) pretreated NG108-15 cells with Flavonoids from the leaves of Diospyros kaki L (FLDK-P70) that resulted in alleviation of H2O2-induced cell injury and apoptosis by up-regulation Bcl-2 expression and improving redox imbalance. The FLDK-P70 further reported to modulate the decline in the intracellular endogenous antioxidants including glutathione and glutathione peroxidase.

      Reactive oxygen/nitrogen species or free radicals can cause DNA damage that can ultimately leads to cancerous growth and important mediator in aging and degenerative disorders (Michel et al., 2012[91]). Carotenoids and flavonoids are amongst the high potency natural antioxidant with excellent abilities to scavenge free radicals (Hanasaki et al., 1994[45]; Fiedor and Burda, 2014[33]). Moreover, the phytochemicals like polyphenols and anthocyanins are also linked with anticancer perspective of the foods. These bioactive components can reduce the DNA damage caused by various genotoxic factors (Kapiszewska et al., 2005[61]). Researchers attempted to study the effects of persimmon and its fraction and one such study was conducted by In-Cheol et al. (2010). They observed that 50 mg/ml of extracts provided higher protection against H2O2 induced DNA damage (Figure 5(Fig. 5); Reference in Figure 5: Jang et al., 2010[56]). These effects could be due to presence of carotenoids and flavonoids (Takahashi et al., 2006[119]), tannin (Lee et al., 2007[78]) and ascorbic acid.
      An external file that holds a picture, illustration, etc. Object name is EXCLI-14-542-g-005.jpg
      Figure 5
      The effect of extracts (50 μg/ml) from persimmon calyx, seed, peel and flesh by methanol, ethanol, acetone and water on 200 μM H2O2-induced DNA damage in human leukocyte. Values are mean with standard deviation of triplicate experiments. NC, 1% DMSO treated negative control; PC, 200 μM H2O2 treated positive control. Values not sharing the same letter are significantly different from one another (p < 0.05) by Duncan's multiple range tests. (Courtesy: Jang et al., 2010)
      The antioxidant potential of persimmon can be exploited to cure various maladies including degenerative disorders, cancer, and improving the skin tone. Thus persimmon and its bioactive molecules are potential as food or cosmetic applications. Diabetes mellitus

      Despite the heterogeneity, hyperglycemia and allied complications are the foremost common metabolic disorders in diabetic patients. Diabetes mellitus can be caused by multiple factors that include hyperglycemia, decreased insulin concentrations or its sensitivity. Sometimes, the beta cells of pancreas are damaged thus limiting the insulin production. These conditions results in insulin-stimulated improper glucose transport in the body (Ziel et al., 1988[136]). In order to overcome these problems, some targeted anti-diabetic drugs are in use as glucose-lowering agents including metformin, rosiglitazone and pioglitazone (Yonemitsu et al., 2001[130]). Drug therapies often lose their effectiveness with time and natural compounds are gaining attention for curing diabetes mellitus and allied complications (Wild et al., 2004[122]; Lapshina et al., 2006[73]). In Asian communities, natural products are more popular to cure type 2 diabetes mellitus (Sa et al., 2005[112]). However, these drugs often accompany escalating side effects. In response, natural foods are replacing these drugs to control the menace of diabetes mellitus and its complications (Sultan et al., 2009[116]).

      Persimmon owing to rich phytochemistry can contribute imperative role in prevention and cure of diabetes mellitus. In this regard, Kawakami et al. (2010[62]) studied the effects of persimmon leaf in conjunction with dietary starch and observed dose-dependent decrease in the blood glucose level in rodent modeling studies. They were of the view that inhibition of pancreas alpha-amylase could be one of major mechanisms responsible for the antidiabetic role of persimmon (Ramasubbu et al., 2004[106]). However, the antidiabetic effects are dependent on degree of polymerization of bioactive components of persimmon. Lee et al. (2007[81]) explicated that the polymeric proanthocyanidins inhibited α-amylase significantly but inhibitory potential of oligomers was little weaker against the same enzyme. In contrast, the inhibitory potential of oligomeric proanthocyanidins against α-glucosidase was higher than oligomeric proanthocyanidins. More recently, Xiao et al. (2013[125]) reviewed the role of dietary polyphenols in diabetes mellitus with special reference to their anti α-amylase activities. They presented highlights of different researches and concluded that the molecular structures influence the inhibition e.g. hydroxylation of flavonoids, unsaturated 2,3-bond in conjugation with a 4-carbonyl group, The galloylated catechins have higher inhibition than nongalloylated catechins; the catechol-type catechins were stronger than the pyrogallol-type catechins, glucoside moiety attached with cyanidin results in higher inhibition than galactoside and diglucoside, and ellagitannins with β-galloyl groups are more effective than α-galloyl and nongalloyl ellagitannins. In comparison, glycosylation, methylation and methoxylation of flavonoids results in reduced antidiabetic activity as witnessed from decreased inhibition of α-amylase.

      Persimmon leaves may also have a therapeutic potential against diabetes due to modulation of insulin dependent glucose transport. The persimmon leaves influence the insulin-stimulated muscular glucose transport and thus can be used as insulin sensitizers for the treatment of diabetes (Kawakami et al., 2010[62]). The ethyl acetate-extracted fraction, water-extracted and ethanol-precipitated fraction of persimmon leaves have potential value in the treatment of diabetes. The mechanism of action of the antioxidant is related to the hypoglycemic effects of extracts from persimmon leaves (Deng et al., 2012[27]).

      Diabetes mellitus results in oxidative stress that involves the due to non-enzymatic glycation of proteins that can lead to the production of undesirable Schiff base and Amadori products (Robertson et al., 2003[109]). In addition, diabetes induced oxidative stress further weakens enzyme mediated antioxidant defense system of the body. Thus, dwindling of oxidative stress is important to cure pathological damage and diabetes complications (Basta et al., 2004[13]; Lapshina et al., 2006[73]). Persimmon is rich in antioxidants and has potent scavenging action against reactive oxygen species (Han et al., 2002[44]; Jung et al., 2005[59]) that can be exploited to control diabetes complications. Lee et al. (2008[79]) investigated the protective effect of proanthocyanidins from persimmon peel in a db/db type 2 diabetes model. The increased oxidative stress in db/db mice was attenuated by the daily administration of 10 mg/kg body weight oligomers. The acetyl-coenzyme A carboxylase mRNA decreased and hepatic carnitine palmitoyltransferase-I mRNA increased as suggested by Moon and Cha (2008[93]). The persimmon polyphenols (PPP) can be categorized into high molecular-persimmon peel polyphenols (HMPPP) and low molecular-persimmon peel polyphenols (LMPPP). The low molecular fractions or LMPPP contains higher amounts of oligomeric proanthocyanidins are more effective than HMPPP (rich in polymeric proanthocyanidins) in reducing the extent of oxidative stress (Yokozawa et al., 2007[128]). Persimmon and its bioactive components/fractions also attenuated the protein expressions of cyclooxygenase-2 and inducible nitric oxide synthase (Yokozawa et al., 2007[128]; Lee et al., 2008[79]). Moreover, persimmon can ameliorate inflammatory responses in diabetes suppression owing to its ability to scavenge free radicals and elevating the ratio of reduced glutathione/oxidized glutathione (Lee et al., 2007[78]). In another investigation, oral administration of persimmon extract at 50 and 100 mg/kg body weight per day to diabetic rats was found to possess significant dose dependant hypoglycemic and hypolipidemic activity (Dewanjee et al., 2009[28]). In the nutshell, administration of persimmon or its functional ingredients may be effective in especially designed preventive strategies for diabetes mellitus or reducing the extent of diabetes complication through lowering blood pressure, blood lipids, and modulating of oxidative stress and inflammatory responses (Lee et al., 2008[79]).

      Go to: Conclusions

      Persimmon is naturally bestowed with bioactive molecules including proanthocyanidins, flavonoids, tannins, phenolic, carotenoids, dietary fiber, and etc. Persimmon leaves and fruit have imperative significance for coronary health because of hypocholesterolemic, anti-atherosclerosis and antioxidant perspectives. Although hypotensive and anticancer responses have been reported for persimmon and its bioactive especially condensed tannin and flavonoids too but yet demands further probing to unveil their therapeutic mechanisms. In the last, utilization of persimmon and its bioactive components can be effective in reducing the burden of diabetes mellitus. However, coherent and systematic research is still required to bring meticulousness.

      Go to: References

      1. Achiwa Y, Hibasami H, Katsuzaki H, Imai K, Komiya T. Inhibitory effects of persimmon (Diospyros kaki) extract and related polyphenol compounds on growth of human lymphoid leukemia cells. Biosci Biotechnol Biochem. 1997;61:1099–1101. [PubMed] [Google Scholar]
      2. Ahn HS, Jeon TI, Lee JY, Hwang SG, Lim Y, Park DK. Antioxidative activity of persimmon and grape seed extract: in vitro and in vivo. Nutr Res. 2002;22:1265–1273. [Google Scholar]
      3. Akagi T, Ikegami A, Yonemori K. DkMyb2 wound-induced transcription factor of persimmon (Diospyros kaki Thunb.), contributes to proanthocyanidin regulation. Planta. 2010;232:1045–1059. [PubMed] [Google Scholar]
      4. Akter MS, Ahmed M, Eun JB. Effect of blanching and drying temperatures on the physicochemical characteristics, dietary fiber composition and antioxidant-related parameters of dried persimmons peel powder. Int J Food Sci Nutr. 2010;61:702–712. [PubMed] [Google Scholar]
      5. Akyıldız A, Aksay S, Benli H, Kıroğlu F, Fenercioğlu H. Determination of changes in some characteristics of persimmon during dehydration at different temperatures. J Food Eng. 2004;65:95–99. [Google Scholar]
      6. Antman EM, Jessup M. Clinical practice guidelines for chronic cardiovascular disorders:a roadmap for the future. JAMA. 2014;311:1195–1196. [PubMed] [Google Scholar]
      7. Arnal L, Besada C, Navarro P, Salvador A. Effect of controlled atmospheres on maintaining quality of persimmon fruit cv. Rojo Brillante. J Food Sci. 2008;73:S26–S30. [PubMed] [Google Scholar]
      8. Asgar MA, Yamauchi R, Kato K. Modification of pectin in Japanese persimmon fruit during the sun-drying process. Food Chem. 2003;81:555–560. [Google Scholar]
      9. Aviram, M Modified form of low density lipoprotein and atherosclerosis. Atherosclerosis. 1993;98:1–9. [PubMed] [Google Scholar]
      10. Bae DK, Choi HJ, Son JH, Park MH, Bae JH, An BJ, et al. The study of developing and stability of functional beverage from korean persimmon (Diospyros kaki L. folium) leaf. Korean J Food Sci Technol. 2000;32:860–6. [Google Scholar]
      11. Baldrick FR, Woodside JV, Elborn JS, Young IS, McKinley MC. Biomarkers of fruit and vegetable intake in human intervention studies:a systematic review. Crit Rev Food Sci Nutr. 2011;51:795–815. [PubMed] [Google Scholar]
      12. Barry TN, Allsop TF, Redekopp C. The role of con-densed tannins in the nutritional value of Lotus pedunculatus for sheep. 5. Effects on the endocrine system and on adipose tissue metabolism. Br J Nutr. 1986;56:607–614. [PubMed] [Google Scholar]
      13. Basta G, Schmidt AM, De Caterina R. Advanced glycation end products and vascular inflammation: implications for accelerated atherosclerosis in diabetes. Cardiovasc Res. 2004;63:582–592. [PubMed] [Google Scholar]
      14. Baxter GF, Sumeray MS, Walker JM. Infarct size and magnesium:insights into LIMIT-2 and ISIS-4 from experimental studies. Lancet. 1996;348:1424–1426. [PubMed] [Google Scholar]
      15. Bei W, Peng W, Ma Y, Xu A. Flavonoids from the leaves of Diospyros kaki reduce hydrogen peroxide-induced injury of NG108-15 cells. Life Sci. 2005;76:1975–1988. [PubMed] [Google Scholar]
      16. Bibi N, Khattak AB, Mehmood Z. Quality improvement and shelf life extension of persimmon fruit Diospyros kaki. J Food Eng. 2007;79:1359–63. [Google Scholar]
      17. Bravo L, Saura-Calixto F, Goni I. Effects of dietary fibre and tannins from apple pulp on the composition of feces in rats. Br J Nutr. 1992;67:463–473. [PubMed] [Google Scholar]
      18. Bubba MD, Giordani E, Pippucci L, Cincinelli A, Checchini L, Galvan P. Changes in tannins ascorbic acid and sugar contents in astringent persimmons during on-tree growth and ripening and in response to different postharvest treatments. J Food Comp Anal. 2009;22:668–677. [Google Scholar]
      19. Butt MS, Nazir A, Sultan MT, Schroën K. Morus alba L Nature’s functional tonic. Trends Food Sci Technol. 2008;19:505–512. [Google Scholar]
      20. Chen G, Wang ZQ, Jia JM. Three minor novel triterpenoids from the leaves of Diospyros kaki. Chem Pharm Bull (Tokyo) 2009;575:532–535. [PubMed] [Google Scholar]
      21. Chen K, Thomas SR, Keaney JF., Jr Beyond LDL oxidation: ROS in vascular signal transduction. Free Radic Biol Med. 2003;35:117–132. [PubMed] [Google Scholar]
      22. Chen KS, Zheng JT, Zhang SL, Gavin SR. The role of ethylene in fruit ripening and softening. J Zhejiang Agr Univ. 1999;25:251–254. [Google Scholar]
      23. Chen XN, Fan JF, Yue X, Wu XR, Li LT. Radical scavenging activity and phenolic compounds in persimmon Diospyros kaki L cv Mopan. J Food Sci. 2008;731:C24–C28. [PubMed] [Google Scholar]
      24. Cho IH, Gong JH, Kang MK, Lee EJ, Park JH, Park SJ, et al. Astragalin inhibits airway eotaxin-1 induction and epithelial apoptosis through modulating oxidative stress-responsive MAPK signaling. BMC Pulm Med. 2014;14:122. [PMC free article] [PubMed] [Google Scholar]
      25. Dauchet L, Amouyel P, Dallongeville J. Fruits, vegetables and coronary heart disease. Nat Rev Cardiol. 2009;6:599–608. [PubMed] [Google Scholar]
      26. Dembitsky VM, Poovarodom S, Leontowicz H, Leontowicz M, Vearasilp S, Trakhtenberg S, et al. The multiple nutrition properties of some exotic fruits: Biological activity and active metabolites. Food Res Int. 2011;44:1671–701. [Google Scholar]
      27. Deng H, Wen Q, Luo Y, Huang Y, Huang R. Influence of different extracts from persimmon leaves on the antioxidant activity in diabetic mice. Zhong Nan Da Xue Xue Bao Yi Xue Ban. 2012;37:469–473. [PubMed] [Google Scholar]
      28. Dewanjee S, Das AK, Sahu R, Gangopadhyay M. Antidiabetic activity of Diospyros peregrina fruit: effect on hyperglycemia hyperlipidemia and augmented oxidative stress in experimental type 2 diabetes. Food Chem Toxicol. 2009;4710:2679–2685. [PubMed] [Google Scholar]
      29. Dillard CJ, German JB. Phytochemicals: nutraceuticals and human health. J Sci Food Agric. 2000;80:1744–56. [Google Scholar]
      30. Dixon AR, Xie DY, Sharma SB. Proanthocyanidins - a final frontier in flavonoid research? New Phytologist. 2005;165:9–28. [PubMed] [Google Scholar]
      31. Ercisli S, Akbulut M, Ozdemir O, Sengul M, Orhan E. Phenolic and antioxidant diversity among persimmon (Diospyrus kaki L.) genotypes in Turkey. Int J Food Sci Nutr. 2007;59:477–482. [PubMed] [Google Scholar]
      32. Fennema OR. Loss of vitamins in fresh and frozen foods. Food Technol. 1977;31:32. [Google Scholar]
      33. Fiedor J, Burda K. Potential role of carotenoids as antioxidants in human health and disease. Nutrients. 2014;6:466–488. [PMC free article] [PubMed] [Google Scholar]
      34. Gali HU, Perchellet EM, Klish DS, Johnson JM, Perchellet JP. Hydrolyzable tanninsotent inhibitors of hydroperoxide production and tumor promotion in mouse skin treated with 12-O-tetradecanoylphobol-13-acetate in vivo. Int J Cancer. 1992;51:425–32. [PubMed] [Google Scholar]
      35. Gato N, Kadowaki A, Hashimoto N, Yokoyama S, Matsumoto K. Persimmon fruit tannin-rich fiber reduces cholesterol levels in humans. Ann Nutr Metab. 2013;62:1–6. [PubMed] [Google Scholar]
      36. Gaziano JM, Hennekens CH. 1993. The role of beta- carotene in the prevention of cardiovascular disease. Ann N Y Acad Sci. 1993;691:148–155. [PubMed] [Google Scholar]
      37. Gondo M, Tanaka N, Tanaka T, Shimomura K, Nakanishi F, Ishimaru KA. Naphthalene glycoside fromcallus cultures of Diospyros kaki. Phytochemistry. 1999;51:879–881. [Google Scholar]
      38. Gorinstein S, Bartnikowska E, Kulasek G, Zemser M, Trakhtenberg S. Dietary persimmon improves lipid metabolism in rats fed diets containing cholesterol. J Nutr. 1998;128:2023–7. [PubMed] [Google Scholar]
      39. Gorinstein S, Kulasek GW, Bartnikowska E, Leontowicz M, Zemser M, Morawiec M, et al. The effects of diets, supplemented with either whole persimmon or phenol-free persimmon, on rats fed cholesterol. Food Chem. 2000;70:303–308. [Google Scholar]
      40. Gorinstein S, Zachwieja Z, Folta M, Barton H, Piotrowicz J, Zemser M, et al. Comparative content of dietary fiber total phenolics and minerals in persimmon and apples. J Agric Food Chem. 2001;49:952–7. [PubMed] [Google Scholar]
      41. Gorinstein S, Zemser M, Haruenkit R, Chuthakorn R, Grauer F, Martin-Belloso O, et al. Comparative content of total polyphenols and dietary fiber in tropical fruits and persimmon. J Nutr Biochem. 1999;10:367–371. [PubMed] [Google Scholar]
      42. Gorinstein S, Zemser M, Weitz M, Halevy S, Deutsch J, Tilis K, et al. Fluorometric analysis of phenolics in Persimmons. Biosci Biotechnol Biochem. 1994;58:1087–1092. [Google Scholar]
      43. Gu H, Li C, Xu Y, Hu W, Chen M, Wan Q. Structural features and antioxidant activity of tannin from persimmon pulp. Food Res Int. 2008;41:208–17. [Google Scholar]
      44. Han J, Kang S, Choue R, Kim H, Leem K, Chung S, et al. Free radical scavenging effect of Diospyros kaki Laminaria japonica and Undaria pinnatifida. Fitoterapia. 2002;73:710–2. [PubMed] [Google Scholar]
      45. Hanasaki Y, Ogawa S, Fukui S. The correlation between active oxygens scavenging and antioxidative effects of flavonoids. Free Radic Biol Med. 1994;16:845–850. [PubMed] [Google Scholar]
      46. Harima S, Nakano R, Yamauchi S, Kitano Y, Yamamoto Y, Inaba A, et al. Extending shelf-life of astringent persimmon Diospyros kaki Thunb fruit by 1-MCP. Postharvest Biol Technol. 2003;29:318–23. [Google Scholar]
      47. Hertog MG, Kromhout D, Aravanis C, Blackburn H, Buzina R, Fidanza F, et al. Flavonoid intake and long-term risk of coronary heart disease and cancer in the seven countries study. Arch Intern Med. 1995;155:381–386. [PubMed] [Google Scholar]
      48. Hibasami H, Achiwa Y, Fujikawa T, Komiya T. Induction of programmed cell death (apoptosis) in human lymphoid leukemia cells by catechin compounds. Anticancer Res. 1996;16:1943–1946. [PubMed] [Google Scholar]
      49. Homnava A, Payne J, Koehler P, Eitenmiller R. Provitamin a (alpha-carotene, beta-carotene and beta-cryptoxanthin) and ascorbic acid content of Japanese and American persimmons. J Food Qual. 1990;13:85–95. [Google Scholar]
      50. Igual M, Castello ML, Ortola MD, Andres A. Influence of vacuum impregnation on respiration rate mechanical and optical properties of cut persimmon. J Food Eng. 2008;86:315–23. [Google Scholar]
      51. Ikegami A, Akagi T, Potter D, Yamada M, Sato A, Yonemori K, et al. Molecular identification of 1-Cys peroxiredoxin and anthocyanidin/flavonol 3-O-galactosyltransferase from proanthocyanidin-rich young fruits of persimmon Diospyros kaki Thunb. Planta. 2009;230:841–855. [PMC free article] [PubMed] [Google Scholar]
      52. Ikegami A, Eguchi S, Kitajima A, Inoue K, Yonemori K. Identification of genes involved in proanthocyanidin biosynthesis of persimmon (Diospyros kaki) fruit. Plant Sci. 2007;172:1037–47. [Google Scholar]
      53. Innami S, Tabata K, Shimizu J, Kusunoki K, Ishida H, Matsuguma M, et al. Dried green leaf powders of Jew's mellow (Corchorus), persimmon (Diosphyros kaki) and sweet potato (Ipomoea batatas poir) lower hepatic cholesterol concentration and increase fecal bile acid excretion in rats fed a cholesterol-free diet. Plant Foods Hum Nutr. 1998;52:55–65. [PubMed] [Google Scholar]
      54. Itamura H, Zheng Q, Akaura K. Industry and research trend of Japanese persimmon. Acta Horticult. 2005;685:37–44. [Google Scholar]
      55. Ittah, Y Sugar content changes in persimmon fruits (Diospyros kaki L.) during artificial ripening with CO2:a possible connection to deastringency mechanisms. Food Chem. 1993;48:25–29. [Google Scholar]
      56. Jang I, Jo EK, Bae MS, Lee HJ, Jeon GI, Park E, et al. Antioxidant and antigenotoxic activities of different parts of persimmon (Diospyros kaki cv. Fuyu) fruit. J Med Plants Res. 2010;4:155–160. [Google Scholar]
      57. Jo C, Son, JH, Shin MG, Byun, MW Irradiation effects on color and functional properties of persimmon (Diospyros kaki L. folium) leaf extract and licorice (Glycyrrhiza Uralensis Fischer) root extract during storage. Radiat Physics Chem. 2003;67:143–8. [Google Scholar]
      58. Jung SK, Kim K, Tae K, Kong G, Kim MK. The effect of raw vegetable and fruit intake on thyroid cancer risk among women:a case-control study in South Korea. Br J Nutr. 2013;109:118–128. [PubMed] [Google Scholar]
      59. Jung ST, Park YS, Zachwieja Z, Folta M, Barton H, Piotrowicz J, et al. Some essential phytochemicals and the antioxidant potential in fresh and dried persimmon. Int J Food Sci Nutr. 2005;56:105–113. [PubMed] [Google Scholar]
      60. Jung UJ, Park YB, Kim SR, Choi MS. Supplementation of persimmon leaf ameliorates hyperglycemia, dyslipidemia and hepatic fat accumulation in type 2 diabetic mice. PLoS One. 2012;7:e49030. [PMC free article] [PubMed] [Google Scholar]
      61. Kapiszewska M, Soltys E, Visioli F, Cierniak A, Zajac G. The protective ability of the Mediterranean plant extract against the oxidative DNA damage. The role of the radical oxygen species and the polyphenol content. J Physiol Pharmacol. 2005;56:183–197. [PubMed] [Google Scholar]
      62. Kawakami K, Aketa S, Nakanami M, Iizuka S, Hirayama M. Major water-soluble polyphenols, proanthocyanidins, in leaves of persimmon (Diospyros kaki) and their alpha-amylase inhibitory activity. Biosci Biotechnol Biochem. 2010;74:1380–1385. [PubMed] [Google Scholar]
      63. Kawase M, Motohashi N, Satoh K, Sakagami H, Nakashima H, Tani S, et al. Biological activity of persimmon (Diospyros kaki) peel extracts. Phytother Res. 2013;17:495–500. [PubMed] [Google Scholar]
      64. Khanal P, Oh WK, Thuong PT, Cho SD, Choi HS. 24-hydroxyursolic acid from the leaves of the Diospyros kaki (Persimmon) induces apoptosis by activation of AMP-activated protein kinase. Planta Med. 2010;76:689–693. [PubMed] [Google Scholar]
      65. Khokhar S, Magnusdottir SGM. Total phenol, catechin, and caffeine contents of teas commonly consumed in the United Kingdom. J Agric Food Chem. 2002;50:565–70. [PubMed] [Google Scholar]
      66. Kiechl S, Willeit J, Egger G, Poewe W, Oberhollenzer F. Body iron stores and the risk of carotid atherosclerosis:Prospective results from the Bruneck study. Circulation. 1997;96:3300–7. [PubMed] [Google Scholar]
      67. Kim SH, Cho SS, Simkhada JR, Park SJ, Lee HJ, Kim TS, et al. Effects and action mechanism of Diospyros kaki on the differentiation of human leukemia HL-60 cells. Oncol Rep. 2010;23:89–95. [PubMed] [Google Scholar]
      68. Kim SY, Jeong SM, Kim SJ, Jeon KI, Park E, Park HR, et al. Effect of heat treatment on the antioxidative and antigenotoxic activity of extracts from persimmon (Diospyros kaki L.) peel. Biosci Biotechnol Biochem. 2006;70:999–1002. [PubMed] [Google Scholar]
      69. Kim YJ, Yokozawa T. Modulation of oxidative stress and melanogenesis by proanthocyanidins. Biol Pharm Bull. 2009;32:1155–1159. [PubMed] [Google Scholar]
      70. Kotani M, Matsumoto M, Fujita A, Higa S, Wang W, Suemura M, et al. Persimmon leaf extract and astragalin inhibit development of dermatitis and IgE elevation in NC/Nga mice. J Allergy Clin Immunol. 2000;106:159–166. [PubMed] [Google Scholar]
      71. Kromhout D, Menotti A, Kesteloot H, Sans S. Prevention of coronary heart disease by diet and lifestyle:evidence from prospective cross-cultural, cohort, and intervention studies. Circulation. 2002;105:893–898. [PubMed] [Google Scholar]
      72. Kumazawa S, Taniguchi M, Suzuki Y, Shimura M, Kwon MS, Nakayama T. Antioxidant activity of polyphenols in carob pods. J Agric Food Chem. 2002;50:373–7. [PubMed] [Google Scholar]
      73. Lapshina EA, Sudnikovich EJ, Maksimchik JZ, Zabrodskaya SV, Zavodnik LB, Kubyshin VL, et al. Antioxidative enzyme and glutathione S-transferase activities in diabetic rats exposed to long-term ASA treatment. Life Sci. 2006;79:1804–1811. [PubMed] [Google Scholar]
      74. Laranjinha JA, Almeida LM, Maderia VM. Reactivity of dietary phenolic acids with peroxyl radicals:antioxidant activity upon low-density lipoprotein peroxidation. Biochem Pharmacol. 1994;48:487–94. [PubMed] [Google Scholar]
      75. Larsson M, Vorrsjö E, Talmud P, Lookene A, Olivecrona G. Apolipoproteins C-I and C-III inhibit lipoprotein lipase activity by displacement of the enzyme from lipid droplets. J Biol Chem. 2013;288:33997–34008. [PMC free article] [PubMed] [Google Scholar]
      76. Lee JH, Lee YB, Seo WD, Kang ST, Lim JW, Cho KM. Comparative studies of antioxidant activities and nutritional constituents of persimmon juice (Diospyros kaki L. cv. Gapjubaekmok) Prev Nutr Food Sci. 2012;17:141–151. [PMC free article] [PubMed] [Google Scholar]
      77. Lee JS, Lee MK, Ha TY, Bok SH, Park HM, Jeong KS, et al. Supplementation of whole persimmon leaf improves lipid profiles and suppresses body weight gain in rats fed high-fat diet. Food Chem Toxicol. 2006;44:1875–83. [PubMed] [Google Scholar]
      78. Lee YA, Cho EJ, Tanaka T, Yokozawa T. Inhibitory activities of proanthocyanidins from persimmon against oxidative stress and digestive enzymes related to diabetes. J Nutr Sci Vitaminol (Tokyo) 2007;53:287–292. [PubMed] [Google Scholar]
      79. Lee YA, Cho EJ, Yokozawa T. Effects of proanthocyanidin preparations on hyperlipidemia and other biomarkers in mouse model of type 2 diabetes. J Agric Food Chem. 2008;56:7781–7789. [PubMed] [Google Scholar]
      80. Lee YA, Cho EJ, Yokozawa T. Oligomeric proanthocyanidins improve memory and enhance phosphorylation of vascular endothelial growth factor receptor-2 in senescence-accelerated mouse prone/8. Br J Nutr. 2010;103:479–489. [PubMed] [Google Scholar]
      81. Lee YA, Kim YJ, Cho EJ, Yokozawa T. Ameliorative effects of proanthocyanidin on oxidative stress and inflammation in streptozotocin-induced diabetic rats. J Agric Food Chem. 2007;55:9395–400. [PubMed] [Google Scholar]
      82. Luo Z. Effect of 1-methylcyclopropene on ripening of postharvest persimmon (Diospyros kaki L.) fruit. LWT Food Sci Technol. 2007;40:285–91. [Google Scholar]
      83. Manach C, Scalbert A, Morand C, Rémésy C, Jiménez L. Polyphenols: food sources and bioavailability. Am J Clin Nutr. 2004;79:727–47. [PubMed] [Google Scholar]
      84. Mashima R, Witting PK, Stocker R. Oxidants and antioxidants in atherosclerosis. Curr Opin Lipidol. 2001;12:411–418. [PubMed] [Google Scholar]
      85. Mathews-Roth MM. Carotenoids in erythropoietic pro-toporphyria and other photosensitivity diseases. Ann N Y Acad Sci. 1993;691:127–138. [PubMed] [Google Scholar]
      86. Matsumoto K, Watanabe Y, Ohya MA, Yokoyama S. Young persimmon fruits prevent the rise in plasma lipids in a diet-induced murine obesity model. Biol Pharm Bull. 2006;29:2532–2535. [PubMed] [Google Scholar]
      87. Matsumoto K, Yokoyama S, Gato N. Bile acid-binding activity of young persimmon (Diospyros kaki) fruit and its hypolipidemic effect in mice. Phytother Res. 2010;24:205–210. [PubMed] [Google Scholar]
      88. Matsumoto K, Yokoyama S, Gato N. Hypolipidemic effect of young persimmon fruit in C57BL/6.KOR-ApoEshl mice. Biosci Biotech Biochem. 2008;72:2651–2659. [PubMed] [Google Scholar]
      89. Matsuo T, Itoo S. The chemical structure of kaki-tannin from immature fruit of the persimmon (Diospyros kaki L.) Agric Biol Chem. 1978;42:1637–1643. [Google Scholar]
      90. Matsuura E, Kobayashi K, Tabuchi M, Lopez LR. Oxidative modification of low-density lipoprotein and immune regulation of atherosclerosis. Prog Lipid Res. 2006;45:466–486. [PubMed] [Google Scholar]
      91. Michel TM, Pulschen D, Thome J. The role of oxidative stress in depressive disorders. Curr Pharm Des. 2012;18:5890–5899. [PubMed] [Google Scholar]
      92. Miller PE, Snyder DC. Phytochemicals and cancer risk: a review of the epidemiological evidence. Nutr Clin Pract. 2012;27:599–612. [PubMed] [Google Scholar]
      93. Moon YJ, Cha YS. Effects of persimmon-vinegar on lipid metabolism and alcohol clearance in chronic alcohol-fed rats. J Med Food. 2008;11:38–45. [PubMed] [Google Scholar]
      94. Mure K, Takeshita T, Morioka I, Arita M. Effects of kakisu (persimmon vinegar) on plasma antioxidant power and urinary 8-isoprostane level. Nihon Eiseigaku Zasshi. 2007;62:32–38. [PubMed] [Google Scholar]
      95. Nakano R, Inoue S, Kubo Y, Inaba A. Water stress induced ethylene in the calix triggers autocatalytic ethylene production and fruit softening in ‘Tonewase’ persimmon grown in a heated plastic-house. Postharvest Biol Technol. 2002;25:293–300. [Google Scholar]
      96. Ohguchi K, Nakajima C, Oyama M, Iinuma M, Itoh T, Akao Y, et al. Inhibitory effects of flavonoid glycosides isolated from the peel of Japanese persimmon (Diospyros kaki 'Fuyu') on melanin biosynthesis. Biol Pharm Bull. 2010;33:122–124. [PubMed] [Google Scholar]
      97. Ouyang P, Bei W, Lai W, Peng W. Effects of flavone from leaves of Diospyros kaki on rat vascular smooth muscle cells proliferation stimulated by native low-density lipoprotein in vitro. Zhong Yao Cai. 2004;27:600–602. [PubMed] [Google Scholar]
      98. Ozen A, Colak A, Dincer B, Guner S. A diphenolase from persimmon fruits (Diospyros kaki L, Ebenaceae) Food Chem. 2004;85:431–7. [Google Scholar]
      99. Park SY, Park SH, Jeon SM, Park YB, Lee SJ, Jeong TS, et al. Effect of rutin and tanic acid supplements on cholesterol metabolism in rats. Nutr Res. 2002;22:293–5. [Google Scholar]
      100. Park YS, Jung ST, Kang SG, Delgado-Licon E, Ayala ALM, Tapia MS. Drying of persimmons (Diospyros kaki L.) and the following changes in the studied bioactive compounds and the total radical scavenging activities. LWT-Food Sci Technol. 2006;39:748–755. [Google Scholar]
      101. Paul M, Mehr, AP, Kreutz R. Physiology of local renin-angiotensin systems. Physiol Rev. 2006;86:747–803. [PubMed] [Google Scholar]
      102. Piretti MV. Polyphenol constituents of the Diospyros kaki fruit. A review. Fitoterapia. 1991;1:3–13. [Google Scholar]
      103. Plumb GW, De Pascual-Teresa S, Santos-Buelga C, Cheynier V, Williamson G. Antioxidant properties of catechins and proanthocyanidins:effect of polymerisation, galloylation and glycosylation. Free Radic Res. 1998;29:351–8. [PubMed] [Google Scholar]
      104. Prakash P, Krinsky NI, Russell RM. Retinoids, carotenoids and human breast cancer cell cultures:A review of differential effects. Nutr Rev. 2000;58:170–176. [PubMed] [Google Scholar]
      105. Rahman MA, Islam AKMS, Khair A, Bala BK. Effect of non polar gases on the storage of persimmon fruits at different temperatures. Pak J Biol Sci. 2002;5:84–7. [Google Scholar]
      106. Ramasubbu N, Ragunath C, Mishra PJ, Thomas LM, Gyémánt G, Kandra L. Human salivary alpha-amylase Trp58 situated at subsite -2 is critical for enzyme activity. Eur J Biochem. 2004;271:2517–2529. [PubMed] [Google Scholar]
      107. Remuzzi G, Ruggenenti P. Overview of randomised trials of ACE inhibitors. Lancet. 2006;368:555–556. [PubMed] [Google Scholar]
      108. Rice-Evans CA, Miller NJ, Paganga J. Antioxidant properties of phenolic compounds. Trends in Plant Sci. 1997;2:152–9. [Google Scholar]
      109. Robertson RP, Harmon J, Tran PO, Tanaka Y, Takahashi H. Glucose toxicity in beta-cells:type 2 diabetes, good radicals gone bad, and the glutathione connection. Diabetes. 2003;52:581–587. [PubMed] [Google Scholar]
      110. Roller M, Clune Y, Collins K, Rechkemmer G, Watzl B. Consumption of prebiotic inulin enriched with oligofructose in combination with the probiotics Lactobacillus rhamnosus and Bifidobacterium lactis has minor effects on selected immune parameters in polypectomised and colon cancer patients. Br J Nutr. 2007;97:676–684. [PubMed] [Google Scholar]
      111. Ros E, Hu FB. Consumption of plant seeds and cardiovascular health:epidemiological and clinical trial evidence. Circulation. 2013;128:553–565. [PMC free article] [PubMed] [Google Scholar]
      112. Sa YS, Kim SJ, Choi HS. The anticoagulant fraction from the leaves of Diospyros kaki L. has an antithrombotic activity. Arch Pharm Res. 2005;28:667–674. [PubMed] [Google Scholar]
      113. Sakanaka S, Tachibana Y, Okada Y. Preparation and antioxidant properties of extracts of Japanese persimmon leaf tea (kakinoha-cha) Food Chem. 2005;89:569–75. [Google Scholar]
      114. Sarkar A, Bishayee A, Chatterjee M. Beta-carotene prevents lipid peroxidation and red blood cell membrane protein damage in experimental hepatocarcinogenesis. Cancer Biochem Biophys. 1995;15:111–125. [PubMed] [Google Scholar]
      115. Singh BB, Vinjamury SP, Der-Martirosian C, Kubik E, Mishra LC, Shepard NP, et al. Ayurvedic and collateral herbal treatments for hyperlipidemia:a systematic review of randomized controlled trials and quasi-experimental designs. Altern Ther Health Med. 2007;13:22–28. [PubMed] [Google Scholar]
      116. Sultan MT, Butt MS, Anjum FM, Jamil A. Influence of black cumin fixed and essential oil supplementation on markers of myocardial necrosis in normal and diabetic rats. Pak J Nutr. 2009;8:1450–1455. [Google Scholar]
      117. Sun L, Zhang J, Lu X, Zhang L, Zhang Y. Evaluation to the antioxidant activity of total flavonoids extract from persimmon (Diospyros kaki L.) leaves. Food Chem Toxicol. 2011;49:2689–2696. [PubMed] [Google Scholar]
      118. Suzuki T, Someya S, Hu F, Tanokura M. Comparative study of catechin compositions in five Japanese persimmons (Diospyros kaki) Food Chem. 2005;93:149–52. [Google Scholar]
      119. Takahashi M, Watanabe H, Kikkawa J, Ota M, Watanabe M, Sato Y, et al. Carotenoids extraction from Japanese persimmon (Hachiya-kaki) peels by supercritical CO2 with ethanol. Anal Sci. 2006;22:1441–1447. [PubMed] [Google Scholar]
      120. Veberic R, Jurhar J, Mikulic-Petkovsek M, Stampar F, Schmitzer V. Comparative study of primary and secondary metabolites in 11 cultivars of persimmon fruit (Diospyros kaki L.) Food Chem. 2010;119:477–83. [Google Scholar]
      121. Wang H, Leng P, Zhao G, Ji Q. Advances in research of storage technology for persimmon. J Fruit Sci. 2004;21:164–6. [Google Scholar]
      122. Wild S, Roglic G, Green A, Sicree R, King H. Global prevalence of diabetes. Diabetes Care. 2004;27:1047–1053. [PubMed] [Google Scholar]
      123. Woodside JV, Young IS, McKinley MC. Fruit and vegetable intake and risk of cardiovascular disease. Proc Nutr Soc. 2013;72:399–406. [PubMed] [Google Scholar]
      124. Wu P-W, Hwang LS. Determination of soluble persimmon tannin by high performance gel permeation chromatography. Food Res Int. 2002;35:793–800. [Google Scholar]
      125. Xiao J, Ni X, Kai G, Chen X. A review on structure-activity relationship of dietary polyphenols inhibiting α-amylase. Crit Rev Food Sci Nutr. 2013;53:497–506. [PubMed] [Google Scholar]
      126. Xing N, Chen Y, Mitchell SH, Young CYF. Quercetin inhibits the expression and function of the androgen receptor in LNCaP prostate cancer cells. Carcinogenesis. 2001;22:409–14. [PubMed] [Google Scholar]
      127. Yamada M, Tairab S, Ohtsuki M, Sato A, Iwanamia H, Yakushijia H, et al. Varietal differences in the ease of astringency removal by carbon dioxide gas and ethanol vapor treatments among Oriental astringent persimmons of Japanese and Chinese origin. Sci Horticulturae. 2002;94:63–72. [Google Scholar]
      128. Yokozawa T, Kim YA, Kim HY, Lee YA, Nonaka G. Protective effect of persimmon peels polyphenol against high glucose-induced oxidative stress in LLC-PK1 cells. Food Chem Toxicol. 2007;45:1979–87. [PubMed] [Google Scholar]
      129. Yokozawa T, Park CH, Noh JS, Roh SS. Role of oligomeric proanthocyanidins derived from an extract of persimmon fruits in the oxidative stress-related aging process. Molecules. 2014;19:6707–6726. [PMC free article] [PubMed] [Google Scholar]
      130. Yonemitsu S, Nishimura H, Shintani M, Inoue R, Yamamoto Y, Masuzaki H, et al. Troglitazone induces GLUT4 translocation in L6 myotubes. Diabetes. 2001;50:1093–1101. [PubMed] [Google Scholar]
      131. Zhao M, Yang B, Wang J, Liu Y, Yu L, Jiang Y. Immunomodulatory and anticancer activities of flavonoids extracted from litchi (Litchi chinensis Sonn) pericarp. Int Immunopharmacol. 2007;7:162–166. [PubMed] [Google Scholar]
      132. Zheng GH, Sugiura A. Changes in sugar composition in relation to invertase activity in the growth and ripening of persimmon (Diospyros kaki) fruits. J Jap Soc Horticul Sci. 1990;59:281–287. [Google Scholar]
      133. Zheng QL, Nakatsuka A, Itamura H. Involvement of negative feedback regulation in wound-induced ethylene synthesis in ‘Saijo’ persimmon. J Agric Food Chem. 2006;54:5875–5879. [PubMed] [Google Scholar]
      134. Zheng, QL, Nakatsuka A, Taira S, Itamura H. Enzymatic activities and gene expression of 1-aminocyclopropane-1-carboxylic acid (ACC) synthase and ACC oxidase in persimmon fruit. Postharvest Biol Technol. 2005;37:190–286. [Google Scholar]
      135. Zhou C, Sheng Y, Zhao D, Wang Z, Tao J. Variation of oleanolic and ursolic acid in the flesh of persimmon fruit among different cultivars. Molecules. 2010;15:6580–6587. [PMC free article] [PubMed] [Google Scholar]
      136. Ziel FH, Venkatesan N, Davidson MB. Glucose transport is rate limiting for skeletal muscle glucose metabolism in normal and STZ-induced diabetic rats. Diabetes. 1988;37:885–890. [PubMed] [Google Scholar]
      137. Zou B, Li CM, Chen JY, Dong XQ, Zhang Y, Du J. High molecular weight persimmon tannin is a potent hypolipidemic in high-cholesterol diet fed rats. Food Res Int. 2012;48:970–977. [Google Scholar]

      Yorum yap


      • #4
        Gyeongnam vilayetindeki olgunluk aşamalarına dayalı olarak çeşitli kültür türlerinin büzücü hurmalarının ( Diospyros kaki Thunb.) Saplarının anti-enflamatuar aktiviteleri

        Jieun Choi , 1, 2 Mi Jeong Kim , 3 Richard Komakech , 1, 2, 4 Haiyoung Jung , 3 ve Youngmin Kang 1, 2
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk reddi
        Bu makale PMC'deki diğer makaleler tarafından alıntılanmıştır . İlişkili Veriler
        Öz


        Arka fon
        Doğal ürünler, enflamatuar durumların önlenmesi ve tedavisi ile ilgili olarak insan sağlığında önemli bir rol oynar. Büyük tıbbi potansiyele sahip bitkilerden biri , ağırlıklı olarak Kore, Japonya ve Çin gibi Asya ülkelerinde yetiştirilen Diospyros kaki'dir . Sıkılaştırıcı D. kaki , Ripene d olana kadar buruk bir tada sahip yabani bir türdür . kaki kaliks, büzücü D. kaki'nin saplarından yapılan geleneksel bir Kore tıbbıdır (TKM) ve yatak ıslatma, kusma ve hıçkırık tedavisinde kullanılır. Bu çalışma, kültivar türleri ve olgunluk aşamalarına dayalı olarak büzücü D. kaki saplarının potansiyel anti-enflamatuar aktivitelerini araştırmak için tasarlanmıştır .


        Yöntemler
        Lokal büzücü D. kaki kültivar türlerinin sap ekstraktlarının anti-enflamatuar etkileri RAW 264.7 hücreleri üzerinde değerlendirildi. Hücre canlılığı, bir Hücre Sayım Kiti-8 ( CCK8) yöntemi kullanılarak ölçüldü . Anti-enflamatuar etkiler, süpernatanın nitrik oksit (NO) konsantrasyonu ölçülerek belirlendi. Hücresel sinyal yolakları, indüklenebilir nitrik oksit sentazın (iNOS) kantitatif polimeraz zincir reaksiyonları ile belirlendi . İNOS ve fosfo-p65'in protein ekspresyonu, western blot kullanılarak belirlendi ve p65'in nükleer lokalizasyonu, RAW 264.7 hücrelerinde eş odaklı görüntüleme kullanılarak belirlendi.


        Sonuçlar
        Aşama 1 (8-9 ay) numunelerinin hepsinin yüksek oranda tanik asit içeriği gösterdiğini ve Gojongsi (Hamyang) saplarının en yüksek içeriğe sahip olduğunu bulduk. Aşama 1 numuneleri aynı zamanda en yüksek NO üretimi inhibisyonunu göstermiştir. İNOS ve fosforile p65 ekspresyonundaki ve p65'in nükleer lokalizasyonundaki azalmalar doza bağımlıydı. Tüm ekstreler 100 ug / ml konsantrasyonun altında toksik değildir.


        Sonuç
        Bu çalışma, büzücü D. kaki'deki tanik asit içeriğindeki değişikliklere ve bunların olgunluk aşamalarıyla ilişkili olarak anti-enflamatuar etkilerine ilişkin fikir vermektedir . Bu sonuçların, doğu tıbbının etkinliğinin doğrulanmasında ve tıbbi kullanım için uygun hasat zamanlamasında yararlı olması beklenmektedir.


        Anahtar Kelimeler: Antiinflamatuar, Sıkılaştırıcı D. kaki , Çeşitler, Kore geleneksel tıbbı
        Şuraya gidin: Arka fon

        Enflamasyon, diyabet, kardiyovasküler hastalıklar, kanser, artrit, obezite, otoimmün hastalıklar ve ayrıca inflamatuar bağırsak hastalığı dahil olmak üzere çok sayıda kronik hastalık ve bozukluğun ilerlemesinde ana faktörlerden biridir [ 1 ]. Etkilenen bölgedeki hasarı sınırlandırarak enfeksiyondan veya doku hasarından sonra bir ilk savunma sağlayan çeşitli hücreleri ve sitokinleri içerir [ 2 ]. Makrofajların, edinilmiş bağışıklık ve doğuştan gelen bağışıklık gibi çeşitli konakçı yanıtlarında rol oynadığı ve aynı zamanda homeostaza dahil olduğu bilinmektedir [ 3 ]. Enfeksiyonun erken evrelerinde inflamatuar reaksiyon sırasında nitrik oksit (NO) ve sitokin üretilir ve biyolojik savunma mekanizmalarında önemli bir rol oynar [ 4]. İnflamasyon sentetik ilaçlar kullanılarak tedavi edilebilmesine rağmen, antisitokin gibi bazı antiinflamatuvar ilaçların çeşitli kinazların aktivitesini bloke etme gibi bazı olumsuz etkileri vardır, bu nedenle enfeksiyonlara karşı konak savunmasında önemli bir azalma ile sonuçlanır [ 1 ]. Bu yan etkilerden bazıları ve mevcut antiinflamatuvar tedavilerin sağlık sorunları nedeniyle, doğal antiinflamatuvar takviyelerin kullanımı daha popüler hale gelmektedir [ 1 ]. Gerçekten de, doğal ürünler enflamatuar durumlar [önlenmesi ve tedavisi ile ilgili olarak, insan sağlığında önemli bir rol oynar 5 - 7]. Sonuç olarak, güvenli ve etkili terapötik ajanlar olarak hizmet etmek için doğal etkili antiinflamatuvar ajanlara olan talep artan bir ilgi çekmiştir [ 8 ]. Bitkilerin antiinflamatuvar potansiyeli, saponinler, glikozitler gibi ikincil metabolitlerin ve tanenler ve flavonoidler dahil fenolik bileşiklerin varlığına bağlanmaktadır [ 9 ]. Ek olarak, bir fenol bileşiği olan tanin gibi bu fitokimyasallar, anti-mutajenik ve anti-kanser etkileri gibi çeşitli fizyolojik fonksiyonlara sahiptir [ 10 , 11 ]. Tanik asit özellikle yüksek bir moleküler ağırlığa sahiptir ve acı tadına neden olan birçok fenolik hidroksil grubu içerir [ 12]. Aslında tat, dil yüzeyindeki tanen ve proteinler arasındaki etkileşimin neden olduğu dehidrasyondan kaynaklanmaktadır [ 13 ]. Robbins ve arkadaşları [ 14 ] tarafından yapılan bir çalışmada , tanenlerin bitkilerin büyük otçullara karşı savunma mekanizmalarında kullandıkları ikincil metabolitlerden biri olduğu bildirilmiştir.

        Trabzon hurması ( Diospyros kaki Başparmak) Ailesi Ebenaceae, serbest radikalleri süpürme kabiliyeti nedeniyle inflamatuar tepkileri iyileştirme potansiyeline sahip bitkilerden biridir [ 15 ]. Bu önemli bitki uzun yıllardır Asya ülkelerinde, özellikle Kore, Çin ve Japonya'da yetiştirilmektedir [ 16 ]. Güney Kore'de, D. kaki'nin çoğu, Gapyeong (Gyeonggi), Byeonghwa (Gyeongbuk) ve Jecheon (Chungbuk) iç bölgelerinde ve kuzey ve doğu kıyılarında [ 17 ] dağılmıştır . Bansi (Chungdo), Danseongsi ve Wolhasi gibi D. kaki çeşitleri, yerel sıcaklık ve toprak koşullarında ekime daha uygun hale getirilmiştir [18 ]. Aslında araştırmalar, D. kaki'nin soğuğa karşı diğer meyve ağaçlarından daha düşük bir toleransa sahip olduğunu göstermiştir [ 19 ]. D. kaki , tatlı çeşitler ve büzücü çeşitler olarak sınıflandırılabilir [ 20 ]. Sıkılaştırıcı D. kaki , suda çözünebilen yüksek tanen içeriğini olgunlaştırarak veya yapay olarak çıkararak burukluğunu azalttıktan sonra yenilebilir [ 21 , 22 ]. D. kaki eti yüzyıllardır yenilmekte ve son zamanlarda meyveler reçel ve sirke haline getirilmektedir [ 23 - 25 ]. Kurutulmuş yapraklar birçok toplulukta yeşil çay olarak da kullanılmaktadır [ 26]. D. kaki'nin tıbbi potansiyeli, içinde bulunan tanenler, flavonoidler, terpenoidler, steroidler, karotenoidler, gallik asit ve protokatekuik asit gibi çeşitli biyoaktif bileşiklere atfedilir [ 27 ]. Birçok fenolik bileşiğin antioksidatif, antiinflamatuvar, anti-kanserojen, anti-mutajenik ve kardiyoprotektif olduğu bilinmektedir [ 28 , 29 ]. D. kaki'nin klinik farmakokinetiği ve saplarının etkinliği eski literatürde iyi bildirilmiştir [ 30 ]. Kaki kaliks, D. kaki'nin meyvesine yapıştırılmış kaliksten yapılan geleneksel bir Kore tıbbıdır (TKM) [ 31]. Korean Herbal Pharmacopoeia'nın 4. baskısında Kaki kaliks, D. kaki'nin olgunlaşmış veya olgunlaşmış meyvesine bağlı kaliks olarak tanımlanmaktadır . Çalışmalar, D. kaki'nin kan damarları üzerinde olumlu etkileri, akciğer güçlenmesi ve ayrıca bronşiyal hastalıkların hafifletilmesi için önemli olduğunu göstermiştir [ 32 , 33 ]. TKM'de, büzücü D. kaki'nin sapları grip, ateroskleroz ve kalp hastalıklarının tedavisinde kullanılmıştır [ 32 , 34 ]. Ek olarak, D. kaki sapları da hıçkırık tedavisi için TKM'de kullanılmıştır [ 32 , 34]; inflamasyonun nedenlerinden biri olduğu bilinen bir durum [ 35 ].

        Çeşitli kronik inflamasyonlarla ilişkili hastalıkların baskılanması için doğal kaynaklardan terapötik hedefler geliştirmek için bir dizi çalışma yapılmış olmasına rağmen [ 1 ], büzücü D. kaki saplarının anti-inflamatuar aktiviteleri üzerine hiçbir çalışma yapılmamıştır. Gyeongnam eyaletindeki olgunluk aşamalarına göre çeşitli kültür türleri. Bu nedenle bu çalışma , çeşitli bölgelerden seçilmiş birkaç büzücü D. kaki çeşidinin, tanik asit içeriği ve anti-enflamatuar etkileri de dahil olmak üzere bitkisel ilaçlar olarak etkinliklerine dayalı olarak optimum hasat zamanını belirlemek için gerçekleştirildi . Ek olarak, tanik asit konsantrasyonu ve antiinflamatuar potansiyelindeki varyasyonları anlamakD. kaki , endüstri ve geleneksel doğu tıbbının gelişimi için önemli olabilir. Yöntemler
        Büzücü D. kaki koleksiyonu


        Bu çalışmada, sırasıyla Hamyang, Hamyang ve Miryang bölgelerinden üç yerel büzücü D. kaki çeşidi (Gojongsi, Danseongsi ve Bansi) toplanmıştır (aşama 1, 19 Ağustos; aşama 2, 14 Ekim; ve aşama 3, 20 Ocak). Örnekler Kore'nin Gyeongsangnam kentindeki Kore Orman Çevre Araştırma Enstitüsünde tanımlandı ve Kore Doğu Tıbbı Enstitüsü'ndeki halka açık bir herbaryuma bırakıldı ve KIOM201501015023- KIOM201501015025 numaralı fişlerle verildi. Büzücü D. kaki örnekler bölgesel özelliklere ve olgunluğa göre toplanmış ve saplar kesilip olgunlaşmamış (Ağustos'tan Eylül'e kadar toplanmış), olgun aşama (Ekim'den Kasım'a kadar toplanmış) ve kurutulmuş aşama (Aralık'tan Ocak'a kadar toplanmış) olarak sınıflandırılmıştır. Büzücü D. kaki'nin saplarından ekstraksiyon

        Bu deneyde kullanılan 9 örnek, Hamyang Gojongsi, Hamyang Danseongsi ve Miryang Bansi'den elde edilen 3 olgunlaşmamış sap örneği, 3 olgun sap örneği ve 3 kuru sap örneğidir. Ekstraksiyon işlemi için kullanılan etanol ve metanol reaktifleri, yüksek performanslı sıvı kromatografi (HPLC) dereceli (JT Baker Inc., Phillipsburg, NJ, ABD) olarak satın alındı. Çözücüler ve numuneler, kullanılmadan önce 0.2 um'lik bir membran filtre (PALL Corporation, Ann Arbor, MI, ABD) ile filtre edildi. 9 örneğin her biri için, 10 g kurutulmuş öğütülmüş örnek 72 saat 250 mL% 70 etanol ile maserasyon yöntemi kullanılarak ekstrakte edildi. Ekstreler filtre kağıdı (ADVANTEC, 110 mm, Toyo Robni kaisha, Japonya) kullanılarak süzüldü ve EYELA N-1200B (Tokyo Rikakikai Co. Ltd., Japonya) verimli döner buharlaştırıcı. Konsantre ekstrakt daha sonra vakumla kurutuldu. Daha sonra 50 mg / mL çözelti, farklı numunelerden her bir özün ayrı ayrı% 80 metanol içerisinde çözündürülmesiyle elde edildi. HPLC analizi için numuneler, enjeksiyon ve analizden önce 0.45 um membran filtre (PALL Corporation, Ann Arbor, MI, ABD) kullanılarak filtre edildi. HPLC kullanılarak tanik asit içeriklerinin analizi

        Bu çalışmada bir HPLC sistemi (Alliance® HPLC, Waters Corporation, Manchester, UK) kullanılmıştır. Kolon bir Phenomenex Luna C18 (2) (250 × 4.6 mm, 5 μm), kolon sıcaklığı 40 ° C ve numune sıcaklığı 25 ° C idi. % 0.1 asitli HPLC dereceli su ve% 0.1 asitli HPLC dereceli Metanolden oluşan mobil faz kullanıldı. Kalibrasyon eğrileri 5 konsantrasyon (25, 50, 100, 150 ve 200 ug / mL) tanik asit standardı (Sigma-Aldrich Co., Inc. FLUKA, Trace SELECT, ABD) kullanılarak analiz edildi. Mobil fazın akış hızı 1.0 mL / dk'ya ayarlandı, standart ürünün enjeksiyon miktarı 10 μL'ye ayarlandı ve 9 örneğin enjeksiyon miktarı 20 μL'ye ayarlandı. Tüm numuneler için analiz süresi toplamda 30 dakikaya ayarlandı. Analitik dalga boyu 190 ila 400 nm'de ölçüldü ve 220 nm'de analiz edildi. Her bileşenin UV spektrumu ölçüldü. HPLC ile ilgili tüm deneyler üç kez tekrarlandı ve içerik analizi ortalama bir değerle tamamlandı. RAW 264.7 hücrelerinin ve hücre canlılığı analizinin hazırlanması (CCK-8 testi)

        RAW 264.7 makrofajlar% 5 CO, 37 ° C 'de, RPMI,% 10 cenin sığır serumu (FBS) ve% 1 antibiyotik içeren 1640 ortamında (WelGENE Daegu, Kore) içinde kültürlenmiştir 2 atmosfer. RAW 264.7 makrofajları, 24 saat boyunca farklı olgunluklarda çeşitli sap ekstresi konsantrasyonları (0, 10, 50, 100, 200, 500 ve 1000 μg / ml) ile muamele edildi. RAW 264.7 makrofaj hücrelerinin substratlar üzerindeki proliferasyonu, hücre sayma kiti analizi (CCK-8, Dojindo, Kumamoto, Japonya) ile belirlendi. Bütün örnekler, 5 x 10 bir yoğunluğa sahip 96 oyuklu bir plaka içerisine yerleştirildi ve tohumlanmıştır 4 de / hücreleri. Absorbans, bir ELISA plaka okuyucu kullanılarak 450 nm'de ölçüldü. Western analizi kullanılarak NO tahlili ve immünoblotlama

        RAW 264.7 hücre hatlarından üretilen NO seviyesi, ticari olarak temin edilebilen bir NO saptama kiti (iNtRON, Inc., Seoul, Kore) kullanılarak belirlendi. RAW 264.7 hücreleri, 1 saat süreyle sap özleri (0, 10, 20, 50 ve 100 ug / ml'de) ile ön işleme tabi tutuldu, ardından lipopolisakkaritlerle (LPS, 1 ug / ml) 24 saat süreyle inkübe edildi. Bütün örnekler, 1 x 10 bir yoğunluğa sahip 48 oyuklu bir plaka içerisine yerleştirildi ve tohumlanmıştır 5hücreler / kuyu. 24 saat inkübe edildikten sonra, 100 uL süpernatan toplandı ve üç kopya halinde oyuklara eklendi; Her kuyuya 50 uL N1 tamponu ilave edildi ve plaka, oda sıcaklığında 10 dakika inkübe edildi. Daha sonra 50 ul N2 tamponu ilave edildi ve nihai reaksiyon, oda sıcaklığında 10 dakika inkübe edildi. Absorbans, çok plakalı bir okuyucu (Lambda Bio-20; Beckman Coulter, Inc., Brea, CA, ABD) kullanılarak 540 nm'de ölçüldü.

        Süpernatanın nitrit konsantrasyonu, bir nitrit standart eğrisi kullanılarak belirlendi. Western blot analizi için RAW 264.7 hücreleri, 1 saat süreyle sap ekstraktları (0, 10, 20, 50 ve 100 ug / ml'de) ile ön işleme tabi tutuldu, ardından 24 saat süreyle LPS (1 ug / ml) ile inkübasyon yapıldı. Bütün örnekler, 1 x 10 bir yoğunluğa sahip bir 6-yuvalı plaka içine yerleştirilmiş ve tohumlanmıştır 6hücreler / kuyu. Hücreler buzla soğutulmuş fosfat tamponlu salin (PBS) ile hasat edildi ve liziz tamponunda (50 mM Tris-HCl, pH 7.5, 150 mM NaCl,% 1 v / v IGEPAL® CA-630, 1 mM PMSF, 1) lize edildi mM sodyum florür ve 10 ug / ml aprotinin ve leupeptin). Hücre lizatları, 4 ° C'de 15 dakika 13,000 rpm'de santrifüjlenerek toplandı. Toplanan süpernatanların protein konsantrasyonu, bir BCA ™ protein deney kiti (Pierce, Rockford, IL, ABD) kullanılarak belirlendi. Tüm lizatlar, SDS-PAGE jeli üzerine aynı miktarda protein ile yüklendi. Proteinler daha sonra bir PVDF membranına (Millipore, Bedford, MA, ABD) aktarıldı. 27 ° C'de 40 dakika boyunca 1xPBST'de% 5 w / v yağsız süt ile bloke edildikten sonra, RNA izolasyonu ve kantitatif gerçek zamanlı PCR

        Toplam RNA, üreticinin talimatlarına göre bir RNeasy Mini Kit (Qiagen, Gaithersburg, MD, ABD) kullanılarak RAW 264.7 hücre hatlarından ekstrakte edildi. Hücreler 1 x 10 bir yoğunlukta plakalandı 66 kuyucuklu bir plakada hücre / oyuk ve 1 saat boyunca 0, 10, 50 ve 100 ug / ml konsantrasyonlarda sap özleri ile ön işleme tabi tutuldu. Daha sonra hücreler, 24 saat boyunca LPS (1 ug / ml) ile uyarıldı. 24 saat inkübasyondan sonra hücreler soğuk PBS ile yıkandı ve toplandı. Toplam RNA'lar, bir ReverTra Ace® qPCR RT Kiti (Toyobo Co, Osaka, Japonya) kullanılarak birinci sarmal cDNA'lara ters transkripsiyona tabi tutuldu ve bir SYBR Green PCR Ana Karışımı kullanılarak gerçek zamanlı PCR (Takara Bio Inc., Shiga, Japonya) ile analiz edildi ( Takara Bio Inc., Shiga, Japonya) özel primerler ile. MRNA ekspresyon seviyesi, kontrol olarak GAPDH kullanılarak hesaplandı. Primer sekansları aşağıdaki gibiydi: indüklenebilir nitrik oksit sentaz (iNOS), ileri 5p- GGCAGCCTGTGAGACCTTTG-3 've geri 5p- GCATTGGAAGTGAAGCGTTTC-3'; GAPDH, ileri 5′-ATGCCTCCTGCACCACCA-3 ′ ve geri 5′- CCATCACGCCACAGTTTCC-3 ′. P65 lokalizasyonu için konfokal mikroskopi

        Sap ekstraktlarının nükleer faktör κB (NF-κB) p65'in nükleer translokasyonu üzerindeki etkisi immünofloresans ile değerlendirildi. Bu deneyler için RAW 264.7 hücreleri, 1 saat süreyle 100 ug / ml sap ekstraktları ile ön işlemden geçirildi ve 30 dakika süreyle LPS (1 ug / ml) ile işlenerek hasat edildi. Hücreler, 10 dakika süreyle 12 oyuklu plakalarda yuvarlak cam kapak fişleri üzerine kaplandı. Örnekler daha sonra soğuk PBS ile yıkandı ve oda sıcaklığında 15 dakika% 4 formaldehit içinde sabitlendi, ardından 4 ° C'de 15 dakika PBS içinde% 0.2 Triton X-100 ile geçirgenleştirildi. Hücreler, PBS içinde% 5 BSA ile 1 saat süreyle bloke edildi ve gece boyunca 4 ° C'de anti-p65 birincil antikoru ile inkübe edildi. PBS ile üç yıkamadan sonra hücreler Alexa Fluor 546-konjuge keçi-anti tavşan IgG'si (Invitrogen, Carlsbad, California, ABD) ile 1 saat oda sıcaklığında inkübe edildi ve sonra tekrar PBS ile yıkandı. istatistiksel analiz

        Her gruptan (deneysel ve kontrol) toplanan veriler ortalama ± SD olarak ifade edildi. Eşleştirilmemiş t-testleri (Prism programında, Graph Pad Software, San Diego, CA; iki kuyruklu, P  <0.05) deney ve kontrol grupları arasındaki farkları analiz etmek için kullanıldı. Sonuçlar
        HPLC kullanılarak tanik asit içeriklerinin analizi


        Farklı saplardan elde edilen özler (Şek. 1) tanik asit içeriklerini belirlemek için HPLC ile analiz edildi. Tüm örneklerin ve standart tanik asidin tutulma süresinin 6 dakika olduğu bulundu. Olgunluğa göre tanik asit içeriklerinin HPLC analizi, tanik asit içeriğinin olgunlaşmamış büzücü D. kaki'de olgun veya kurutulmuş olanlardan daha yüksek olduğunu gösterdi (Şek. 2). Şekil 1'de gösterildiği gibi. 2Hamyang Gojongsi'den kurutulmuş olgunlaşmamış büzücü D. kaki'nin sapları en yüksek tanik asit içeriğine (2.597 mg / g), ardından Hamyang Danseongsi (2.350 mg / g) ve ardından Miryang Bansi'ye (2.217 mg / g) sahipti. Tanik asit içeriği, olgunlaşmamış D. kaki saplarının en yüksek tanik asit konsantrasyonuna sahip olması ve en az kurutulmuş saplarda bulunması ile olgunluk derecesine göre azalma eğilimi göstermiştir . Miryang Bansi saplarındaki tanik asit içeriği, Hamyang Gojongsi ve Hamyang Danseongsi saplarına kıyasla, olgunlaşmamış ve olgun aşama arasında (2,217 mg / ml'den 0,615 mg / ml'ye) daha hızlı azaldı.

        Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig1_HTML.jpg

        Şekil 1
        Hamyang'daki Gojongsi, Hamyang'daki Danseongsi ve Miryang'daki Bansi'nin üç farklı bölgesinden büzücü D. kaki'nin görünümü farklı mevsimlerde elde edildi. 1: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmamış olgunlaşmamış büzücü D. kaki'nin (SUIAP) sapı. 2: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmamış olgun büzücü D. kaki'nin (SUMAP) sapı. 3: Hamyang (Gojongsi), Hamyang (Danseongsi) ve Miryang'da (Bansi) kurutulmuş büzücü D. kaki (SDAP) sapı


        Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig2_HTML.jpg
        İncir. 2
        Tanik asit içeriklerinin analizi. Büzücü D. kaki'de farklı olgunluk aşamalarından sapların tanik asit içeriği . Özetlenmiş veriler, daha önce yayınlanmış olan Choi ve ark. (2017) JALS 51 (3): 49–60 Sap ekstraktlarının hücre canlılığı üzerindeki etkileri

        Sonuçlar, 10, 50 ve 100 μg / ml'lik konsantrasyonlarda kurutulmamış olgunlaşmamış büzücü D. kaki sapı ekstresinin, kontrol hücrelerine kıyasla RAW 264.7 hücrelerinin canlılığını artırdığını ve daha yüksek konsantrasyonların (200, 500, 1000 μg / ml) olduğunu göstermektedir. ) hücrelerin canlılığı üzerinde önemli olumsuz etkilere sahipti (Şek. 3).

        Bir resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig3_HTML.jpg
        Şekil 3
        RAW 264.7 makrofaj hücrelerinde çeşitli sap ekstraktlarının hücre canlılığı üzerindeki etkileri. Hücreler, 24 saat boyunca çeşitli sap ekstraktlarının konsantrasyonları (0, 10, 50, 100, 200, 500, 1000 ug / ml) ile muamele edildi. Hücre canlılığı, CCK-8 deneyi kullanılarak ölçüldü. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001, **** P  <0.0001 Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde NO üretimi üzerindeki etkileri

        Tüm numune özütleri, LPS ile aktive edilmiş RAW 264.7 makrofajlarında NO üretimi üzerinde önleyici etkiler gösterdi. Olgunlaşmamış büzücü D. kaki'nin saplarından elde edilen ekstreler ile muamele edilen hücreler , daha olgun sap ekstreleri ile muamele edilenlere kıyasla NO üretiminde daha büyük bir azalma gösterdi (Şek. 4).
        Resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig4_HTML.jpg
        Şekil 4
        LPS ile indüklenen RAW 264.7 hücrelerinde NO üretimi üzerindeki çeşitli sap ekstraktlarının inhibe edici etkileri. Hücreler, 1 saat süreyle çeşitli konsantrasyonlarda (0, 10, 20, 50, 100 ug / ml) sap ekstraktları ile ön işleme tabi tutuldu ve ardından LPS (1 ug / ml) ilave edildi ve 24 saat inkübe edildi. 24 saat sonra ortamdaki nitrit konsantrasyonları NO Saptama Kiti ile belirlendi. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001, **** P  <0.0001 Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde iNOS ekspresyonu üzerindeki etkileri

        İNOS ekspresyonu, 100 μg / ml'de özüt muameleleri ile güçlü bir şekilde inhibe edildi (Şekil. 5a). Olgunlaşmamış büzücü D. kaki'den elde edilen sap ekstraktları, doza bağlı bir şekilde iNOS'un protein ekspresyonunu azaltmıştır (Şek.​(Şekil 5b).5b). Bu sonuçlar, ekstraktların protein seviyesinde olduğu kadar mRNA'da iNOS enziminin ekspresyonunu düzenlediğinden, ekstrelerin LPS ile indüklenen NO üretimi üzerindeki inhibitör etkilerinin iNOS ekspresyonunun bastırılmasından kaynaklandığını kuvvetle göstermektedir. Şekil 5 Sap ekstraktlarının RAW 264.7 makrofajlarında iNOS ekspresyonunun LPS ile uyarılan yukarı regülasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle farklı konsantrasyonlarda (0, 10, 50, 100 ug / ml) sap ekstraktları ile ön işleme tabi tutulmuş ve ardından 24 saat boyunca LPS (1 ug / ml) ile uyarılmıştır. a iNOS seviyeleri RT-qPCR ile ölçüldü ve GAPDH'ye normalize edildi. b Hücreler, LPS (1 ug / ml) ile 24 saat inkübasyondan önce 1 saat boyunca belirtilen konsantrasyonlarda sap özleri ile ön işleme tabi tutuldu. İNOS ve-aktin protein ekspresyonu western blot analizi ile değerlendirildi. Sonuçlar, en az üç bağımsız deneyin ortalama ± SD'si olarak sunulur. * P  <0.05, ** P  <0.01, *** P  <0.001 Sap ekstraktlarının LPS ile uyarılan RAW 264.7 hücrelerinde NF-κB'nin aktivasyonu üzerindeki etkileri

        Şekil 1'de gösterildiği gibi. 6a, fosforile p65, ekstraktların konsantrasyonunun artırılmasıyla önemli ölçüde inhibe edildi. Pozitif kontrol, LPS ile uyarılan RAW 264.7 hücreleri, p65'in çekirdeğe translokasyonunda dramatik artışlar gösterdi, ancak LPS ile uyarılmış NF-κB nükleer translokasyonu, sap ekstraktında ön işlemden sonra belirgin şekilde bastırıldı (Şek.​(Şekil 6b).6b). Bu sonuçlar, sap ekstraktının p65'in fosforilasyonunu ve nükleer translokasyonunu inhibe ederek NF-κB'nin aktivasyonunu inhibe ettiğini göstermektedir.

        Resim, illüstrasyon vb. İçeren harici bir dosya. Nesne adı 12906_2019_2659_Fig6_HTML.jpg
        Şekil 6
        Sap ekstraktlarının LPS kaynaklı NF-kB aktivasyonu üzerindeki inhibe edici etkileri. a Sap ekstraktlarının RAW 264.7 makrofajlarda LPS ile indüklenen p65 fosforilasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle LPS (1 ug / ml) ile inkübasyondan önce, belirtilen konsantrasyonlarda 1 saat süreyle sap özleri ile ön işleme tabi tutuldu. P-p65 ve p-aktinin protein ekspresyonu, western blot analizi ile değerlendirildi. b Sap ekstraktlarının RAW 264.7 makrofajlarda LPS ile indüklenen p65 nükleer translokasyonu üzerindeki inhibe edici etkisi. Hücreler, 1 saat süreyle sap ekstraktları (100 ug / ml) ile ön işleme tabi tutuldu, ardından 30 dakika süreyle LPS (1 ug / ml) ile uyarıldı. Örnekler, anti-p65 antikoru, Alexa Fluor 546 keçi anti-tavşan antikoru ve DAPI ile boyandı, ardından konfokal mikroskopi analizi ile belirlendi Tartışma

        D. kaki , karotenoidler, tanenler, flavonoidler, şekerler, hidrokarbonlar, lipidler, hidrokarbonlar, aromatikler, terpenoidler ve steroidler gibi çeşitli tıbbi biyoaktif bileşiklere sahiptir. Büzücü D. kaki , vahşi bir türdür ve tamamen olgunlaşana kadar buruk bir tada sahiptir, bu aşamada tanen içeriği tamamen çözünmez bir yapıya dönüşür. Suda çözünür tanen bileşenleri içeren sıkıcı D. kaki'nin acı bir tadı vardır ve tanik asidin yaşlanmayı geciktirici, kanser önleyici ve otçul savunma etkilerine sahip olduğu gösterilmiştir [ 13 , 20 , 25 ]. Büzücü D. kaki'nin saplarından ekstrakt elde ettik .ve olgunluk seviyelerine göre tanik asit içeriğini analiz etti. Farklı olgunluk aşamalarında üç tür büzücü D. kaki'nin tanik asit içerikleri, tüm olgunlaşmamış sapların, olgun ve kurutulmuş saplardan daha yüksek tanik asit içeriğine sahip olduğunu gösterdi. Bu çalışmanın sonuçları Jeong [ 18 , 34 ] tarafından yapılan bir araştırmanın sonuçlarıyla tutarlıdır ve kuruma işlemi sırasında burukluk giderildikçe D. kaki'deki tanik asit konsantrasyonunun azaldığını göstermektedir. D. kaki , üç aşamalı S şeklinde bir büyüme eğrisi gösterir ve şeker içeriğinin, özellikle Ekim ayından sonra güneş ışığından önemli ölçüde etkilendiği bildirilmiştir [ 36]. Bu çalışmada, yararlı bileşen içeriği D. kaki'nin büyüme aşamasına bağlı olarak önemli ölçüde farklıydı . Del Bubba vd. [ 37 ], ekili Rojo Brillante ve Kaki Topo'daki çözünür tanik asit içeriğinin Temmuz'dan Kasım'a arttığını, ancak Aralık'ta hızla azaldığını, şeker içeriğinin ise Eylül'den itibaren arttığını buldu. Ek olarak, sıcaklık, aylık yağış, güneşlenme süresi ve günlük aralık gibi çeşitli hava faktörlerinin D. kaki meyve ağırlığını ve kalitesini etkilediği gözlenmiştir [ 17 ]. Analiz edilen dokuz numuneden, olgunlaşmamış büzücü D. kaki'nin saplarıHamyang Gojongsi'den en yüksek tanik asit içeriği (2.597 mg / g) vardı. Myrang Bansi örneklerinden elde edilen tanik asit içeriği, sırasıyla, olgunlaşmamış ve olgun aşamalarda 2.217 mg / g'dan 0.615 mg / g'ye önemli ölçüde azalmıştır. Lee [ 38 ] ayrıca Cheongdo Bansi meyvelerinin fenol içeriklerinin Temmuz ve Ağustos aylarında ve Eylül ve Ekim aylarında hızla azaldığını bildirdi. Bu çalışmada, üç farklı bölgeden büzücü D. kaki saplarının tanik asit içerikleri, olgun aşamada tanik asit içeriğinde önemli farklılıklar göstermiştir. Büzücü D. kaki'nin tanik asit içeriğinin önceki analiziüç farklı bölgeden (Sancheong Gojongsi, Sancheong Danseongsi ve Miryang Bansi), tanik asit içeriğinin kurutulmuş D. kaki'de kurutulmuş olanlara göre % 30 daha yüksek olduğunu gösterdi [ 39 ]. 2015 ve 2016 yıllarında Gyeongsangnam-do eyaletindeki üç çeşitte tanik asit içeriklerindeki değişim benzer eğilimler gösterdi. Büzücü D. kaki'nin kullanımını artırmak için , olgunluğa göre tanik asit içeriğini araştırdık ve büzücü D. kaki hasat etmenin önemli olduğunu belirledik .tamamen olgunlaştıklarında; tanik asidin en düşük olduğu bir zamanda. Bununla birlikte, kapsamlı sonuçlar için çeşitli mevsimlerde daha fazla analiz yapılması gerekir. Çevre koşullarındaki varyasyondan kaynaklanan etkilere ek olarak, D. kaki'nin burukluğu da genetik faktörlere bağlanabilir [ 40 ]. Diospyros kaki'nin meyvesinde büyük miktarda proantosiyanidin biriktirdiği ve bunun da buruk tadı verdiği bilinmektedir [ 41 ]. Proantosiyanidin biyosentez yollarının transkripsiyonel düzenlenmesi, farklı hurma meyveleri çeşitlerindeki değişen burukluk seviyelerine atfedilen birçok faktörden biri olabilir [ 40 , 42]. Proantosiyanidinlerin regülasyonu için birbirleriyle bir protein kompleksi oluşturan Myb transkripsiyon faktörü (DkMYB4) ve bHLH transkripsiyon faktörü (DkMYC1), farklı D. kaki çeşitlerinde proantosiyanidinlerin farklı ekspresyonunda [ 41 ] ve dolayısıyla varyasyonda merkezi bir role sahip olabilir. içlerinde burukluk düzeyinde. Ayrıca, hurmadan elde edilen WD40-tekrar proteininin, meyvelerde proantosiyanidin birikimini düzenlemek için persimmon'da MYB-bHLH-WD40 kompleksleri oluşturmak üzere proantosiyanidin biyosentezi DkMYB2 ve DkMYB4 düzenleyicileri ile etkileşime girdiği gözlenmiştir [ 42 ].

        Sıkılaştırıcı D. kaki'nin sapları Kore'de geleneksel ilaç olarak (Kaki kaliks olarak bilinir) ve yatak ıslatma, kusma ve hıçkırık tedavisinde kullanılmaktadır. Çalışmalar ayrıca D. kaki'nin anti-enflamatuar etkileri olduğunu da göstermiştir . Makrofajlar, çeşitli preinflamatuar aracılar ürettikleri için enflamatuar reaksiyonların gelişimi için kritiktir. NO biyolojik savunma mekanizmalarında önemli bir rol oynar [ 4 ] ancak aşırı NO üretimi, romatoid artrit ve otoimmün bozukluklar gibi inflamatuar hastalıkların gelişmesine neden olur [ 43 ]. Bu nedenle, NO üretimini engellemek, anti-enflamatuar tedaviler için ana hedeftir. Bu nedenle, büzücü saplarından elde edilen ekstrelerin olup olmadığını araştırdık. D. kaki , LPS ile uyarılan iltihaplı bir durumda NO üretimini ve iNOS protein ifadesini bloke etti. Olgunlaşmamış büzücü D. kaki'nin en etkili olduğu ve doza bağlı olarak hareket ettiği bulundu (Şek.​(Şekil 4).4). Şekil 1'de gösterildiği gibi.​Şekil 5,5Olgunlaşmamış büzücü D. kaki'nin saplarından elde edilen özler, doza bağlı bir şekilde iNOS'un protein ekspresyonunu azaltmıştır. Çoğu hücre tipinde NF-B, iltihaplanma ile ilgili önemli bir transkripsiyonel faktördür. NF-κB, pro- ve anti-inflamatuar özelliklere sahip bir dimerik molekül ailesidir. Memelilerde, NF-κB ailesi beş proteinden oluşur: NF-κB1 (p50 / 105), NF-κB2 (p52 / 100), Rel A (p65), Rel B ve c-Rel [ 34 , 44 ]. Bunlardan p65 / p50 heterodimer, en baskın proinflamatuar kompleks ve p65 nükleer translokasyondur ve DNA bağlanması tipik olarak NF-κB yolağının aktivasyonu olarak tanımlanır [ 45]. LPS gibi harici uyaranlarla aktivasyon üzerine, IκB proteini fosforile edilir, bozulur ve çekirdeğe yer değiştirir. Bu nedenle, IκB'nin degradasyonu, NF-κB'nin gen transkripsiyonunu düzenlediği çekirdeğe translokasyonunu serbest hale getirir. NF-κB aktivasyonu, proinflamatuvar mediyatörlerin ve iNOS, COX-2 ve NO gibi sitokinlerin transkripsiyonuna yol açar [ 46]. Sap özlerinin NO üretimini baskıladığını ve transkripsiyonel ve transkripsiyon sonrası seviyelerde iNOS ekspresyonunu düşürdüğünü ve ayrıca LPS ile uyarılan RAW 264.7 hücrelerinde p65 nükleer translokasyonunu azalttığını bulduk. Bu sonuçlar, sap özlerinin, p65 fosforilasyonunu azaltarak NF-KB'nin inaktivasyonu yoluyla iNOS ekspresyonunu inhibe ettiğini gösterir. RAW 264.7 makrofajlarında NF-KB yolağının inhibisyonu, pro-enflamatuar mediyatörleri aşağı regüle etti ve dolayısıyla olgunlaşmamış büzücü D. kaki'nin saplarının anti-enflamatuar etkilerini sergiledi . Sapların yanı sıra, önceki çalışma, D. kaki'nin meyvelerinin, serbest radikalleri süpürme kabiliyeti nedeniyle inflamatuar tepkileri iyileştirme potansiyeline sahip olduğunu da göstermiştir [ 15, 34 ]. Sonuç olarak, olgunlaşmamış büzücü D. kaki'nin saplarının anti-enflamatuar potansiyeli , hastalık durumlarının tedavisinde kullanılmak üzere kullanılabilir. Sonuç

        Bu çalışma , Gyeongnam eyaletindeki büzücü D. kaki ( Diospyros kaki Thunb.) Saplarının tanik asit içeriğini ve anti-enflamatuar aktivitelerini , kültür türlerine ve olgunluk aşamalarına göre araştırdı ve etkinliklerine göre optimum hasat süresini önermek için: bitkisel bir ilaç. Analiz edilen tüm numunelerin tanik asit içerdiği bulundu ve evre 1 (8-9 aylık) numuneler, özellikle Gojongsi'den (Hamyang) olanlar olmak üzere en yüksek tanik asit içeriği yüzdesine sahipti. Ayrıca sap ekstraktlarının antienflamatuvar etkileri doğrulanmış ve etkilerinin olgunluğa göre azaldığı görülmüştür. Bu çalışma, büzücü D. kaki'nin tanik asit içeriğinin nasıl olduğuna dair temel bilgiler sağlar.farklı olgunluk düzeylerinde saplar değişir. Bu özütlerin anti-enflamatuar etkilerinin, doğu tıbbının etkinliğinin doğrulanmasında yardımcı olması beklenmektedir. Büzücü D. kaki'nin tıbbi ve tıbbi olmayan kullanımı için optimum hasat sürelerinin 8-9 ay olduğunu öne sürüyoruz , ancak bu bulguların işbirliği için daha fazla araştırma yapılması gerekiyor. Teşekkürler

        Bu çalışmada kullanılan D. kaki örneklerini özel olarak tanımlayan Kore, Gyeongsangnam-do'daki Kore Orman Çevre Araştırma Enstitüsü'nden Dr. SM Kang'a özellikle teşekkür ederiz . Kısaltmalar

        CCK8 Hücre Sayma Kiti-8
        COX-2 Siklooksijenaz-2
        DNA Deoksiribonükleik asit
        HPLC Yüksek performanslı sıvı kromatografisi
        INOS Uyarılabilir nitrik oksit sentaz
        LPS Lipopolisakkarit
        NF-Κb Nükleer faktör-kappa B
        HAYIR Nitrik oksit
        PCR Polimeraz zincirleme reaksiyonu
        RNA Ribonükleik asit
        TKM Geleneksel Kore tıbbı
        Yazar katkıları

        JC deneyi gerçekleştirdi, MK biyoaktif kimyasal analizi gerçekleştirdi, HJ & RK makaleyi eleştirel bir şekilde revize etti ve YK tüm örnekleri topladı ve çalışma tasarımını ve makalenin tartışma bölümünü yazdı. Tüm yazarlar, makalenin son bilimsel yazısını tartıştı ve üzerinde anlaştı. Yazarların bilgileri

        Jieun Choi (MS): Bilim ve teknoloji Üniversitesi, Kore Oryantal Tıp enstitüsü kampüsünde yüksek lisans öğrencisi. Mi Jeong Kim (PhD): Kore Biyobilim ve Biyoteknoloji Araştırma Enstitüsü, İmmünoterapi Araştırma Merkezi'nde doktora sonrası araştırmacı. Richard Komakech: Bilim ve teknoloji Üniversitesi, Kore Doğu Tıbbı enstitüsü kampüsünde doktora öğrencisi ve Uganda, Sağlık Bakanlığı Doğal Kemoterapötik Araştırma Enstitüsü'nde araştırmacı. Haiyoung Jung (PhD): Kore Biyobilim ve Biyoteknoloji Araştırma Enstitüsü, İmmünoterapi Araştırma Merkezi'nde baş araştırmacı. Sorumlu yazar Youngmin Kang (Ph.D): Kore Oryantal Tıp Enstitüsü'nde baş araştırmacı ve Kore Bilim ve Teknoloji Üniversitesi Profesörü. Finansman

        Bu çalışma, Kore Bitkisel Tıbbı ile İlişkili Yeni Maya Suşu [KIOM G15050 onaylı ] kullanılarak Anti fungisitin Geliştirilmesi ; Diospyros kaki Calyx [hibe sayısı K17690]; Endüstrinin talebine dayalı olarak Kore Bitkisel Tıbbı İle İlgili Patent Mayası kullanılarak Kozmetik Korumanın Geliştirilmesi [hibe numarası K18720]; Standardize Edilmiş Bitkisel Kaynakların Uygulamalı Geliştirilmesi [hibe numarası KSN1911420]; Kore Oryantal Tıp Enstitüsü'nden (KIOM), Kore Cumhuriyeti Bilim ve BİT Bakanlığı aracılığıyla. Veri ve materyallerin mevcudiyeti

        Ham veriler, Kore Oryantal Tıp Enstitüsü'nün Standart Bitkisel Kaynaklar Merkezi'ndeki halka açık bir depoda saklanmıştır ve yazarların makul talebi üzerine kullanılabilir. Etik onay ve katılma izni

        Uygulanamaz. Yayın izni

        Uygulanamaz. Çıkar çatışması

        Yazarlar, rakip çıkarları olmadığını beyan ederler. Dipnotlar

        Yayıncının Notu

        Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yargı yetkisi iddiaları konusunda tarafsız kalır. Katılımcı Bilgileri

        Jieun Choi, E-posta: rk.er.moik@iohcej .

        Mi Jeong Kim, E-posta: rk.er.moik@600otit .

        Richard Komakech, E-posta: rk.er.moik@drahcir .

        Haiyoung Jung, E-posta: rk.er.bbirk@gnuoyiah .

        Youngmin Kang, E-posta: rk.er.moik@gnakmy .

        Şuraya gidin: Referanslar

        1. Arulselvan P, Fard TM, Tan SW, Gothai S, Fakurazi S, Norhaizan EM, Kumar SS. Enflamasyonda antioksidanların ve doğal ürünlerin rolü. Oxidative Med Cell Longev. 2016; 2016 : 5276130. doi: 10.1155 / 2016/5276130. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        2. Huang BP, Lin CH, Chen YC, Kao SH. Perilla frutescens yaprak özütünün lipopolisakkarit ile uyarılan RAW 264. 7 hücreleri üzerindeki anti-enflamatuar etkileri. Mol Med Rep. 2014; 10 (2): 1077–1083. doi: 10.3892 / mmr.2014.2298. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        3. Kim EO, Lee H, Cho CH, Kim YJ, Kim DO. Kurutulmuş hurmaların etil asetat fraksiyonunun (Diospyros kaki thumb.) THP-1 insan akut monositik lösemi hücre hattı üzerindeki antioksidan kapasitesi ve anti-enflamatuar etkisi. J Korean Soc Appl Biol Chem. 2011; 54 (4): 606–611. doi: 10.3839 / jksabc.2011.087. [ CrossRef ] [ Google Akademik ]
        4. Matsuda H, Morikawa T, Ando S, Toguchida I, Yoshikawa M. Nitrik oksit üretimini inhibe edici aktivite ve etki mekanizması için flavonoidlerin yapısal gereksinimleri. Bioorg Med Chem. 2003; 11 (9): 1995–2000. doi: 10.1016 / S0968-0896 (03) 00067-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        5. Yuan G, Wahlqvist ML, He G, Yang M, Li D. Doğal ürünler ve anti-enflamatuar aktivite. Asia Pac J Clin Nutr. 2006; 15 (2): 143–152. [ PubMed ] [ Google Scholar ]
        6. Javadi B, Sahebkar A. Otoimmün miyokardite karşı anti-inflamatuar ve immünomodülatör aktivitelere sahip doğal ürünler. Pharmacol Res. 2017; 124 : 34–42. doi: 10.1016 / j.phrs.2017.07.022. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        7. Azab Abdullatif, Nassar Ahmad, Azab Abed. Doğal Ürünlerin Anti-Enflamatuar Aktivitesi. Moleküller. 2016; 21 (10): 1321. doi: 10.3390 / molecules21101321. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        8. Gosslau A, Li S, Ho CT, Chen KY, Rawson NE. Antiinflamatuar aktivitelerine ilişkin çalışmalarda doğal ürün karakterizasyonunun önemi. Mol Nutr Food Res. 2011; 55 (1): 74–82. doi: 10.1002 / mnfr.201000455. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        9. Boudet AM. Fenolik bileşiklerdeki araştırmanın gelişimi ve güncel durumu. Fitokimya. 2007; 68 (22): 2722–2735. doi: 10.1016 / j.phytochem.2007.06.012. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        10. Minussi RC, Rossi M, Bologna L, Cordi L, Rotilio D, Pastore GM, Durán N. Ticari şarapların fenolik bileşikleri ve toplam antioksidan potansiyeli. Food Chem. 2003; 82 (3): 409–416. doi: 10.1016 / S0308-8146 (02) 00590-3. [ CrossRef ] [ Google Akademik ]
        11. Veberic R, Jurhar J, Mikulic-Petkovsek M, Stampar F, Schmitzer V. 11 hurma meyvesi (Diospyros kaki L.) çeşidinde birincil ve ikincil metabolitlerin karşılaştırmalı çalışması Food Chem. 2010; 119 (2): 477–483. doi: 10.1016 / j.foodchem.2009.06.044. [ CrossRef ] [ Google Akademik ]
        12. Hagerman AE, Riedl KM, Jones GA, Sovik KN, Ritchard NT, Hartzfeld PW, Riechel TL. Biyolojik antioksidanlar olarak yüksek moleküler ağırlıklı bitki polifenolikleri (tanenler). J Agric Food Chem. 1998; 46 (5): 1887–1892. doi: 10.1021 / jf970975b. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        13. Parfitt DE, Yonemori K, Honsho C, Nozaka M, Kanzaki S, Sato A, Yamada M. Asya hurması çeşitleri, buruk ve büzücü olmayan türler arasındaki ilişkiler. Ağaç Genet Genomları. 2015; 11 (2): 1–9. doi: 10.1007 / s11295-015-0848-z. [ CrossRef ] [ Google Akademik ]
        14. Robbins CT, Hanley TA, Hagerman AE, Hjeljord O, Baker DL, Schwartz CC. MautzWW. Bitkileri geviş getirenlere karşı korumada tanenlerin rolü: protein bulunabilirliğinde azalma. Ekoloji. 1987; 68 (1): 98–107. doi: 10.2307 / 1938809. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        15. Butt SM, Sultan TM, Aziz M, Naz A, Ahmed W, Kumar N, Imran M. Persimmons (Diospyros kaki) meyve: gizli fitokimyasallar ve sağlık iddiaları. EXCLI J. 2015; 14 : 542–561. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
        16. Hidalgo C, Mateo E, Mas A, Torija MJ. Hurmaların fermentasyonu ve asetifikasyonundan izole edilen maya ve asetik asit bakterilerinin tanımlanması (Diospyros kaki) Gıda Mikrobiyolü. 2012; 30 (1): 98–104. doi: 10.1016 / j.fm.2011.12.017. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        17. Park Y, Kim MJ, Park SB, Oh SI. Hava koşullarının meyve özellikleri ve Sangju, Gyeongsangbuk-do'daki 'Sangjudungsi' hurma çeşidinin verimi üzerindeki etkisi. Meteorol için Korece J Agric. 2015; 17 (4): 340–347. doi: 10.5532 / KJAFM.2015.17.4.340. [ CrossRef ] [ Google Akademik ]
        18. Jeong CH, Kwak JH, Kim JH, Choi GN, Jeong HR, Kim DO, Heo HJ. Olgunlaşma sırasında Daebong-gam'ın (Diospyros kaki) besin bileşenlerindeki değişiklikler. Kore J Gıda Koruyucusu. 2010; 17 (4): 526–532. [ Google Scholar ]
        19. Kang SK, Ahn KH, Choi ST, Do KR, Cho KS. Çevre dostu meyve bahçelerinden gelen hurma (Diospyros kaki'Fuyu ') meyvelerinde dikim yeri ve meyve verme yönünün meyve donu zararına etkisi. KJ Org Agric. 2014; 22 (4): 789–799. doi: 10.11625 / KJOA.2014.22.4.789. [ CrossRef ] [ Google Akademik ]
        20. Park CG, Lee KC, Lee DW, Choo HY, Albert PJ. Saflaştırılmış Hurma tanen ve tanik asidin fasulye böceği Riptortus clavatus'un hayatta kalması ve üremesi üzerindeki etkileri. J Chem Ecol. 2004; 30 (11): 2269–2283. doi: 10.1023 / B: JOEC.0000048788.35693.23. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        21. Arnal L, Rio MA. Hurma meyvelerinde karbondioksit ve nitrojenle zenginleştirilmiş atmosferler ile burukluğun giderilmesi “Rojo brillante” J Food Sci. 2003; 68 (4): 1516–1518. doi: 10.1111 / j.1365-2621.2003.tb09676.x. [ CrossRef ] [ Google Akademik ]
        22. Li PM, Du GR, Ma FW. Sıkılaştırıcı olmayan hurmaya karşı büzücü farklı meyve dokularının fenolik konsantrasyonu ve antioksidan kapasitesi. Sci Hortic. 2011; 129 (4): 710–714. doi: 10.1016 / j.scienta.2011.05.024. [ CrossRef ] [ Google Akademik ]
        23. Igual M, Castelló ML, Ortolá MD, Andrés A. Isıl işlem görmeden ozmotik dehidrasyon ile üretilen hurma reçelinin bazı kalite özellikleri. Int J Gıda Müh. 2011; 7 (5): 1–15. [ Google Scholar ]
        24. Jeong YJ, Lee GD, Kim KS. Tepki yüzeyi metodolojisi kullanılarak hurma sirkesinin fermantasyon durumu için optimizasyon. Korece J Food Sci Technol. 1998; 30 (5): 1203–1208. [ Google Scholar ]
        25. Kim JK, Kang WW, Oh SL, Kim JH, Han JH, Moon HK, aChoi JU. Çeşitli bölgelerden gelen geleneksel kuru hurmaların kalite özelliklerinin karşılaştırılması. J Korean Soc Food Sci Nutr. 2004; 33 (1): 140–145. doi: 10.3746 / jkfn.2004.33.1.140. [ CrossRef ] [ Google Akademik ]
        26. Oh HM, Kim MK. Kuru yaprak tozu, hurma ve yeşil çay yapraklarının su ve etanol ekstraktlarının 12 aylık sıçanlarda lipit metabolizması ve antioksidatif kapasite üzerine etkileri. Korece J Nutr. 2001; 34 : 285–298. [ Google Scholar ]
        27. Kawase M, Motohashi N, Satoh K, Sakagami H, Nakashima H, Tani S, Molnár J. Hurma (Diospyros kaki) soyma ekstraktlarının biyolojik aktivitesi. Phytother Res. 2003; 17 (5): 495–500. doi: 10.1002 / ptr.1183. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        28. Chen XN, Fan JF, Yue X, Wu XR, Li LT. Hurmada radikal süpürme aktivitesi ve fenolik bileşikler (Diospyros kaki L. cv. Mopan) J Food Sci. 2008; 73 (1): 24–28. doi: 10.1111 / j.1750-3841.2007.00587.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        29. Young AL, Cho EJ, Tanaka T, aYokozawa T. Hurma kaynaklı proantosiyanidinlerin oksidatif strese ve diyabete bağlı sindirim enzimlerine karşı inhibe edici aktiviteleri. J Nutr Sci Vitaminol. 2007; 53 (3): 287-292. doi: 10.3177 / jnsv.53.287. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        30. Jeong SI, Cho JK, Mok JY, Kim SJ, Park JM, Jeon IH, Jang S. I. Hurma yapraklarının büyüme sırasında antioksidan aktivitesi. Korece J Farmakognozi. 2010; 41 (4): 255-63.
        31. Zhang H, Zheng X, Su D. Mikrodalga muamelesi ve Cryptococcus laurentii ile armutun mavi küf çürümesinin hasat sonrası kontrolü . J Gıda Müh. 2006; 77 (3): 539–544. doi: 10.1016 / j.jfoodeng.2005.06.066. [ CrossRef ] [ Google Akademik ]
        32. Kore Tıp Okulları Herbology Yayın Kurulu. Herbology [Boncho-hak] Seoul: Young-Lim Press; 2004. [ Google Scholar ]
        33. Çin Farmakopesi Komisyonu. Çin Halk Cumhuriyeti'nin Farmakopesi hacmi Ι. Pekin: Çin Tıbbi Eczacılık Bilimi ve Teknolojisi Yayınevi; 2010. [ Google Scholar ]
        34. Choi J. Gyeongnam eyaletindeki kültivar türleri ve olgunluk aşamalarına göre büzücü hurmaların (Diospyros kaki Thunb) saplarının mikrobiyal tanımlama, tanik asit içerikleri ve anti-enflamatuar aktiviteleri. Yüksek lisans tezi. Teknoloji ve Bilim Üniversitesi; 2017.
        35. Chang F, Lu C. Hiccup: gizem, doğa ve tedavi. J Neurogastroenterol Motil. 2012; 18 (2): 123–130. doi: 10.5056 / jnm.2012.18.2.123. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        36. Sugiura A, Zheng GH, Yonemori K. Büyüme aşaması III sırasında kontrollü sıcaklıklarda hurma meyvesinin büyümesi ve olgunlaşması. HortScience. 1991; 26 (5): 574–576. doi: 10.21273 / HORTSCI.26.5.574. [ CrossRef ] [ Google Akademik ]
        37. Del Bubba M, Giordani E, Pippucci L, Cincinelli A, Checchini L, Galvan P. Ağaç üzerinde büyüme ve olgunlaşma sırasında ve farklı hasat sonrası muamelelere yanıt olarak buruk hurmalarda tanenlerde, askorbik asit ve şeker içeriğindeki değişiklikler. J Gıda Besteleri Anal. 2009; 22 (7): 668–677. doi: 10.1016 / j.jfca.2009.02.015. [ CrossRef ] [ Google Akademik ]
        38. Lee YR, Chung HS, Moon KD. Cheongdobansi'nin polifenol içeriğindeki değişiklik, gelişme sırasında meyveyi hurmaya çevirir. Kore J Gıda Koruyucusu. 2011; 18 (1): 13–17. doi: 10.11002 / kjfp.2011.18.1.013. [ CrossRef ] [ Google Akademik ]
        39. Choi JE, Lee GY, Moon BC, Kang MS, Kim YJ, Kang MY. Kore'nin Geongnam eyaletinde geleneksel Kore tıbbı (kaki Calxy) olarak büzücü hurmalardan ( Dispyros kaki Thunb.) Tanik asit içeriklerinin analizi . Kor Herb Med Inform. 2016; 4 (1): 35–42. [ Google Scholar ]
        40. Nishiyama S, Onoue N, Kono A, Yonemori K, vd. Hortic J. 2018; 87 (3). 10.2503 / hortj.OKD-140.
        41. Nishiyama Soichiro, Onoue Noriyuki, Kono Atsushi, Sato Akihiko, Yonemori Keizo, Tao Ryutaro. Trabzon hurması meyvesindeki burukluk kaybının altında yatan bir gen düzenleyici ağın karakterizasyonu. Planta. 2017; 247 (3): 733–743. doi: 10.1007 / s00425-017-2819-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        42. Naval M, Muñoz GF, Lloret A, Besada C, Salvador A, Badenes LM, Rios G. Trabzon hurmasından elde edilen bir WD40-tekrar proteini, proantosiyanidin biyosentezi DkMYB2 ve DkMYB4 düzenleyicileri ile etkileşime girer. Ağaç Genet Genomları. 2016; 12 (1). 10.1007 / s11295-016-0969-z.
        43. Yoon SB, Lee YJ, Park SK, Kim HC, Bae H, Kim HM, Park W. Scutellaria baicalensis su özütünün LPS ile aktive edilmiş RAW 264.7 makrofajları üzerindeki anti-enflamatuar etkileri. J Ethnopharmacol. 2009; 125 (2): 286–290. doi: 10.1016 / j.jep.2009.06.027. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        44. Verma IM, Stevenson JK, Schwarz EM, Van Antwerp D, Miyamoto S. Rel / NF-kappa B / I kappa B ailesi: samimi birliktelik ve ayrışma öyküleri. Genes Dev. 1995; 9 (22): 2723–2735. doi: 10.1101 / gad.9.22.2723. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        45. Paul FG, Michael HP, Mukundan A, Nada M. Enflamasyonun çözünürlüğü: prostaglandin E2, uyarılmış romatoid sinovyal fibroblastlarda bireysel NF-kappaB alt birimlerinin (P65, P50) nükleer trafiğini ayırır. J Immunol. 2005; 175 (10): 6924–6930. doi: 10.4049 / jimmunol.175.10.6924. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        46. Kim Kyoung-Su, Lee Dong-Sung, Kim Dong-Cheol, Yoon Chi-Su, Ko Wonmin, Oh Hyuncheol, Kim Youn-Chul. Lipopolisakkaritle Uyarılmış RAW 264.7 Makrofajlarda Diospyros kaki'den İzole Edilen Koussarik ve Betulinik Asitlerin Anti-Enflamatuar Etkileri ve Etki Mekanizmaları. Moleküller. 2016; 21 (9): 1206. doi: 10.3390 / molecules21091206. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

        Yorum yap


        • #5
          Trabzon hurması ( Diospyros kaki L.) yaprakları: Geleneksel kullanımlar, fitokimya ve farmakolojik özellikler üzerine bir inceleme

          Yazar bağlantıları yer paylaşımı panelini açarChunyan Xie Zhisheng Xie Xinjun Xu Depo Yang
          Daha fazla göster
          Paylaş
          Anmak
          https://doi.org/10.1016/j.jep.2015.01.007Hakları ve içeriği alın

          Öz
          Etnofarmakolojik alaka

          Shi Ye (Çince) olarak bilinen Trabzon hurması ( Diospyros kaki L.) yaprakları, iskemi felci, anjin , iç kanama, hipertansiyon, ateroskleroz ve bazı bulaşıcı hastalıkların tedavisinde geleneksel bir Çin tıbbı olarak uzun bir geçmişe sahiptir Trabzon hurması yaprakları, Japonya, Kore ve Çin gibi Asya'da giderek daha popüler hale gelen sağlıklı ürünler, kozmetikler vb. olarak kullanılabilir.

          İncelemenin amacı
          Bu makale , etnofarmakolojik kullanımı değerlendirmek ve terapötik potansiyelleri ve gelecekteki araştırma fırsatlarını keşfetmek için hurma yapraklarının etnofarmakolojisini, fitokimyasını , analitik yöntemlerini, biyolojik aktivitelerini ve toksikolojisini gözden geçirmiştir.

          Malzemeler ve yöntemler
          Trabzon hurması yaprakları ile ilgili bilgiler İnternet (Google Scholar, Baidu Scholar, Elsevier, ACS, Pudmed, Web of Science, CNKI ve EMBASE kullanılarak) ve kütüphaneler aracılığıyla toplandı. Ayrıca bazı yerel kitaplardan da bilgi alındı.

          Sonuçlar
          Trabzon hurması yaprakları Çin ilaç sisteminde önemli bir rol oynamıştır. Hurma yapraklarının ana bileşimleri flavonoidler , terpenoidler vb. İdi . Ekstraktlar ve formülasyonlar üzerinde yapılan bilimsel çalışmalar , antioksidatif, hipolipidemik , antidiyabetik , antibakteriyel, hemostaz aktiviteleri ve kardiyovasküler sistem üzerindeki etkiler gibi çok çeşitli farmakolojik aktiviteleri ortaya çıkardı . Farmakolojik aktivitelere dayanarak, hurma yaprakları kardiyovasküler hastalık tedavisi, hemostaz, antibakteriyel, antiinflamatuar ve güzellik tedavisi dahil olmak üzere klinikte yaygın olarak kullanılmıştır.

          Sonuçlar
          Trabzon hurması yaprakları muhtemelen serebral arteriyoskleroz , diyabet, hipertansiyonun önlenmesi ve tedavisinde terapötik potansiyele sahiptir . İn vivo ve in vitro iskemi / reperfüzyon hasarına karşı önemli nöro-koruma gösterdi . Dahası, bağışıklık fonksiyonunu düzenleyebilir ve iltihabı önleyebilir. Bu farmakolojik etkilerden sorumlu olan bireysel biyoaktif bileşikleri in vitro ve in vivo ve etki şekillerini keşfetmek için daha fazla araştırmaya ihtiyaç vardır . Tıbbi uygulamalara entegre edilmeden önce daha fazla güvenlik değerlendirmeleri ve klinik araştırmalar yapılmalıdır.

          Grafik özet
          İndir: Yüksek çözünürlüklü görseli indirin (169 KB)
          Kısaltmalar

          BİR KEDİ asil koenzim a-kolesterol açiltransferaz Yaşlar gelişmiş glikasyon son ürünleri AHA alfa hidroksi asitler Ang anjiyotensin AOPP'ler gelişmiş oksidasyon protein ürünleri APTT aktive parsiyel tromboplastin zamanı SORUNUZ 1 apoptoz sinyali düzenleyen kinaz 1 AST aspartik transaminaz BP
          tansiyon CI kalp indeksi CK kreatin kinaz CO kardiyak çıkışı CPIP ortak tepe izovolümetrik intra-ventriküler basınç CVP merkezi venöz basınç DHU
          19, 24-dihidroksi ursolik asit DOX doksorubisin ET endothefin GSH-Px Glutatyon peroksidazı GVH graft-versus-host HDL yüksek yoğunluklu lipoprotein
          HK heksokinaz İK kalp atış hızı I / R iskemik reperfüzyon LDH laktat dehidrogenaz LDL Düşük yoğunluklu lipoprotein LVEDP sol ventrikül diyastol sonu basınç
          LVP sol ventriküler basınç LVSP sol ventriküler sistolik basınç LVWI sol ventriküler iş indeksi MAKO orta serebral arter tıkanıklığı HARİTA ortalama arter basıncı MBC minimum bakteri konsantrasyonları MDA malondialdehit MIC minimum inhibisyon konsantrasyonu 2-NBDG 2- [N- (7-nitrobenz-2-oksa-1,3-diazol-4-il) amino] -2-deoksi-D-glikoz HAYIR nitrik oksit NOS nitrik oksit sentaz OA oleanolik asit PA proantosiyanidin PAf proantosiyanidin fraksiyonu PLE
          Trabzon hurması yaprağı ekstresi PLEg hurma yaprağı ekstresi 2 ′ ′ - galloly kısmı PLF hurma flavonoid bırakır PT protrombin zamanı RA rotungenik asit
          SCF sinüs koroner akışı SOD süperoksit dismutaz SRBC koyun kırmızı kan hücresi STZ streptozotosin TC toplam kolesterol TCM Geleneksel Çin Tıbbı
          TG trigliserid TPVR toplam periferik vasküler direnç TT trombin zamanı TTI gerginlik zaman indeksi UA ursolik asit VCMC'ler vasküler düz kas hücreleri
          4-SES 4 damar tıkanıklığı

          Bu makalede incelenen kimyasal bileşikler
          Quercetin (PubChem Müşteri Kimliği: 5280343)
          Kaempferol (PubChem Müşteri Kimliği: 5280863)
          İzokersetin (PubChem Müşteri Kimliği: 5280804)
          Myricitrin (PubChem Müşteri Kimliği: 5281673)
          Oleanolik asit (PubChem CID: 10494)
          Ursolik asit (PubChem CID: 64945)

          Anahtar kelimeler
          Diospyros kaki L.
          Trabzon hurması yaprakları
          Flavonoidler
          Terpenoidler
          Kardiyovasküler etkiler

          Yorum yap

          Hazırlanıyor...
          X