Duyuru

Collapse
No announcement yet.

PİNE BARK, ÇAM Kabuğu Ekstresi

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • #16
    Nitrik oksit ve inflamasyon

    Doç. Dr. Alper B. İSKİT

    1. İnflamasyon

    İnflamasyon, inflamatuar bir stim ulusa cevap olarak elde edilen dinamik, olaylar zinciridir. İnflamasyon alanında vazodilatasyonu takiben kan akımı değişiklikleri, damar permeabilite artışı, ödem sıvısı oluşumu, lokal lokosit birikimi gözlenir. Bu birbirini takip eden olayların gelişiminden çeşitli mediatörler sorumludur. İnflamasyonda mediatör çağı 1927 yılın-da Thomas Lewis’in, histaminin klasik olarak "üçlü cevap" olarak bilinen etkisini tanımlamasıyla başlamıştır. Lewis, dokunun künt travmaya maruz kalmasıyla açığa çıkan histaminin, doğrudan doğruya lokal kan damarlarına etki ederek travma bölgesinde:

    1. Saniyeler içerisinde kızarıklık,
    2. 15-30 saniye içinde, travmanın birkaç santimetre çevresine yayılan kırmızılık,
    3. 2-3 dakika içinde vasküler permeabilite artışına bağlı olarak oluşan lokal ödem geliştiğini tanımlamıştır.

    Histamin, inflamasyonda rol oynadığı gösterilen ilk mediatörlerden biri olmasına karşın, bu olayda çok sayıda mediatörün katkısının olduğu daha sonra gösterilmiştir. Bradikinin, P maddesi, 5-hidroksitriptamin, prostaglandinler, lökotrienler, PAF, kompleman sistemi ürünleri, trombin ... ve nitrik oksit bunlardan başlıcalarıdır. Nitrik oksitin inflamasyonun birçok aşamasında rol oynadığı bilinmektedir. Farklı ajanların uyarısı ile monositler, mast hücreleri, makrofajlar, Kupffer hücreleri ve nötrofiller nitrik oksit sentezleme yeteneklerine sahiptirler. Vazodilatasyon, vasküler permeabilitedeki değişim ve ekstravazasyon, lökosit migrasyonu (aktivasyonu) gibi inflamasyonla beraber giden olaylarda nitrik oksit önemli rol oynar (1).

    2. Nitrik oksit (NO)

    Aynı anda farklı hücre türlerinde sentezlenen, otokrin veya parakrin mediatör fonksiyonu gören NO, nitrik oksit sentaz (NOS) enzimi ile sentezlenmektedir. Bilinen üç NOS geninde sekiz DNA sekansı olduğu saptanmıştır: nöral NOS (nNOS), endotelyal NOS (eNOS), indüklenebilir NOS (iNOS). nNOS ve eNOS'a birlikte yapısal NOS (cNOS) denirken, iNOS uyaranlarla indüklenebilme özelliğine sahiptir. Endotoksin ve proinflamatuar sitokinlerin (bazı interlökinler, TNF ve interferon) iNOS'u indükleyerek NO üretimini arttırdığı gösterilmiştir. iNOS vasküler endotelyal hücreler, düz kas hücreleri, makrofajlar ve farklı parankim hücrelerini içeren çeşitli hücrelerce eksprese ve aktive edilmektedir (2). iNOS ekspresyonu için genellikle birkaç saate ihtiyaç vardır. Lipopolisakkaritler ile uyarılan makrofajlarda 2 saat sonra iNOS (mRNA) ve 4 saat sonra iNOS proteini meydana gelmektedir (3).

    NOS stereospesifik olarak yarı esansiyel amino asit olan L-arjinini substrat olarak kullanmakta ve sonuçta NO ve L-citrulline oluşmaktadır. cNOS ve iNOS arasında bazı önemli farklılıklar vardır. İlk olarak cNOS aktivitesi hücre içine kalsiyum akışına bağlıyken iNOS aktivitesi için istirahat halinde hücre içindeki kalsiyum miktarı yeterlidir. cNOS aktivitesi kalsiyum akışı ile tetiklendiği için aktivite geçicidir ve az miktarda NO üretilir (pikomolar konsantrasyonda). Zıt o larak iNOS aktivitesi uzun sürer ve nanomolar düzeyinde NO oluşur (2).

    Her iki enzimde NG-monometil-L-arjinin (L-NMMA), NG-nitro-L-arjinin-metil ester (L-NAME) veya NG-nitro-L-arjinin (L-NNA) gibi guanidin ucundaki değişiklik gösteren L-arjininin tarafından stereospesifik olarak inhibe edilmektedir. iNOS aktivitesi daha çok L-arjinin analoğu olan L-canavanin ve amino-guanidin tarafından inhibe edilmektedir. cNOS aktivitesi glukokortikoidlerden etkilenmezken, iNOS indüksiyonu gluko kortikoidlerce inhibe edilir. Bununla birlikte iNOS eksprese edildiyse aktivitesi glukokortikoidlerden etkilenmemektedir (3,4). NO aşırı üretimini azaltmanın en uygun yolu NOS için uygun substratı azaltan L-arjinin analogları kullanmaktır. NO'nun birçok etkisi çözünebilir hem içeren guanilat siklaz aktivasyonu ile oluşur. Sonuçta oluşan cGMP, hücre içi serbest kalsiyum seviyelerinde azalmaya neden olan hücre içi olayların tetiklenmesini sağlamaktadır. NO'nun biyolojik etkileri hücre içi kalsiyum seviyelerini etkileyen maddeler ile yakından ilişkilidir. Serbest oksijen radikali olarak NO oldukça reaktiftir ve birçok madde ile etkileşebilir. NO kanda hemoglobinin hem grubu ile etkileşerek hızlı bir şekilde nitrit ve nitrata metabolize olur. Kanda nitrat, NO'nun esas stabil biyoreaksiyon ürünüdür. Hemoglobin olmayan doku kültüründe esas stabil biyoreaksiyon ürünü nitrittir. NO ayrıca proteinlerin ve aminoasitlerin thiol (-SH) gruplarıile reaksiyona girer ve sonuçta sabit nitrosothioller oluşabilir (2, 3, 5).

    NO’nun yararlı etkileri

    NO molekülü pikomolar düzeylerde cNOS ile fizyolojik ve koruyucu etki gösterir. Nitrik oksit, fizyolojik şartlarda mukus salgısını ve epitelial hücrelerde sıvı sekresyonunu arttırarak mikroplara, toksinlere ve safra tuzları gibi irritan maddelere karşı koruyucu etki gösterir. Endotel kaynaklı NO farklı organlarda kan basıncı, kan akımı ve vasküler tonusun fizyolojik olarak düzenlenmesinde rol oynar. NO salınımı farklı reseptör bağımlı (asetilkolin, bradikinin, histamin, adenin nükleotidler ve serotonin) ve bağımsız (serbest yağ asitleri) agonistlerce uyarılabilir. Endotel hücreleri mekanoreseptörler gibi davranır ve dolaşımdaki kan tarafından endotele oluşturulan fiziksel bası kuvvetini biyokimyasal sinyallere dönüştürür (6).

    NO’nun zararlı etkileri

    NO nanomolar düzeylerde iNOS üzerinden proinflamatuar ve hasar oluşturucu etkiler gösterir. Oksidatif stres altında NO’nun apoptozisi, sitotoksisiteyi, mutagenezisi ve DNA hasarını arttırıcı etkisi vardır. Ayrıca NO demir-sülfür içeren enzimlerin fonksiyonunu değiştirir, mitokondrial solunumu bozucu zararlı etkiler gösterir (6). NO’nun süperoksitle reaksiyonu peroksinitrit üzerinden hidroksil ve nitrojen dioksit radikallerini oluşturur (7). Oluşan peroksinitrit hücrede nükleer bir enzim olan poli(ADP-riboz) sentazı (PARS) aktive eder. PARS enzimi nikotinamid adenin dinükleotidi substrat olarak kullanır. Sonuçta bu olay ATP tüketimine ve hücrenin ölümüne yol açabilir (8).

    3. Sistemik İnflamatuvar Yanıt Sendromu (Systemic Inflammatory Response Syndrome; SIRS)​​​​​​​

    SIRS, endotoksemi, bakteriyemi, viremi, fungemi, sepsis, septik şok ve çoklu organ yetmezliği gibi birçok patolojinin ortak klinik görüntüsüdür. Sepsis "enfeksiyona sistemik inflamatuar yanıt" olarak tanımlanabilir. Özellikle Gram (-) bakterilerin meydana getirdiği SIRS, sık görülmesi, yüksek ölüm oranı (%30-90) ve kolay deneysel metodlar kurulabilmesi nedeniyle Gram (+)’lere göre daha çok araştırma konusu olmuştur. Birçok inflamatuar mediatörün bu tablo da rolü bilinmekle beraber son yirmi yıl içerisinde deneysel çalışmalar endotelden salınan mediatörler ve özellikle NO üzerinde yoğunlaşmıştır (9). Aslında SIRS çoğu zaman "endotel disfonksiyonu" ile beraber seyretmektedir.

    4. SIRS iç in bazı deneysel hayvan modelleri​​​​​​​

    Endotoksin ile SIRS oluşturulması​​​​​​​


    Endotoksin, Gram (-) bakterilerin hücre dış duvarının en önemli komponenti olup temel olarak lipopolisakkarit (LPS) ve çeşitli oranlarda bakteri duvar komponentlerini içerir. LPS’de her serotip için farklı antijenik özellik taşıyan bir oligosakkarid zinciri, benzer bakteriler arasında aynı yapıyı gösteren bir kor oligosakkaridi ve tüm serotipler için aynı özelliğe sahip lipid komponenti, "Lipid A", bulunur. Literatürde LPS ve endotoksin aynı anlamda kullanılsada aralarında fark vardır. LPS saflaştırılmış glikolipid yapıya sahiptir. Endotoksin ise LPS’e ek olarak az miktarda hücre duvarı proteinleri, lipidler, lipoproteinler ve polisakkarit içerir. LPS toksisitesi çoğunlukla içerdiği Lipid A yapıdan kaynaklanır. Sıçanlarda tek doz bolus yüksek endotoksin uygulaması vazodilatasyon, kardiyovasküler kollaps ve erken ölüme neden olur. Düşük doz ise hiperdinamik cevap ve kardiyak debi artışı yapar. Deneysel model sonucunda oluşan tablo "enfeksiyona sistemik inflamatuar yanıt” benzeridir.

    LPS genelde liyofilize toz halinde ticari olarak temin edilir. Liyofilizasyon işlemi fenol eksraksiyonu, triklorasetikasid ekstraksiyonu, fenol-kloroform-eter ekstraksiyonu, jel filtrasyon gibi farklı kimyasal işlemler uygulanarak üretici firmalar tarafından yapılır. E. coli, Salmonella typhimurium, Klebsiella pneumoniae, Pseu-domonas aeruginosa gibi birçok Gram (-) bakteriden elde edilmesine rağmen deneysel septik şok çalışmaları E. coli’den elde edilen LPS’ler üzerinde yoğunlaşmıştır. Bu grupta 026:B6, O55:B5, O111:B4 gibi farklı serotiplere sahip farklı suşlardan elde edilmiş LPS türleri mevcuttur. Toz halindeki LPS planlanan deneysel çalışma prokollerine göre suda çözünerek deney hayvanlarına periton veya damar içine tek doz veya infüzyon şeklinde verilir. Literatür incelendiğinde uygulanacak dozun 1 mg/kg ile 80-100 mg/kg aralığıda geniş bir doz aralığına sahip olduğu gözlenebilir (10, 11, 12, 13, 14). Sağkalım (survival) çalışmalarında dozlar genelde yüksektir (15).

    Sıklıkla SIRS oluşturmak ve inflamasyonu indüklemek için LPS kullanılmıştır. Enfeksiyona bağlı insan SIRS’da ve septik şokta meningokoksemi hariç düşük veya saptamayacak düzeyde LPS bulunmaktadır. Ayrıca insan SIRS olgularının yaklaşık yarısından sorumlu olan gram-pozitif sepsiste, LPS bulunmamaktadır. Verilen tek tip mikroorganizmaya ait LPS, insan septik şok tablosundaki çeşitli türlerdeki canlı bakterilerin yerini tutmamaktadır. Bu nedenle çeşitli mikroorganizmaların gözlendiği çeşitli “çekal bağlama ve delme” modelleri bazı araştırıcılar tarafından deneysel hayvan modeli olarak tercih edilir.

    Çekal bağlama ve delme (cecal ligation and puncture; CLP) ile SIRS oluşturulması

    Cerrahi yoğun bakım ünitelerinde gözlenen en sık SIRS nedeni gastrointestinal sistem duvarının bütünlüğünün bozulmasıdır (perfore apandisit, divertikülit, kolon perforas-yonu gibi). Bu durumu taklit etmek için bazı deneysel modeller geliştirilmiştir. En çok kullanılan deneysel model CLP’dir. Diğer modellerden farklı olarak çok çeşitli mikroorganizmaların (polimikrobial) gözlendiği enfeksiyona bağlı sistemik inflamasyon tablosu gelişir. Kan ve dokularda artan sayıda bakterinin bulunması, SIRS ve septik şoktaki rastlanan problemleri LPS kullanılan modellerden daha yakın taklit etmektedir. Uygulaması kolay ve ucuzdur. LPS veya dışarıdan bakteri uygulamasına gerek yoktur.

    Öncelikle sıçanlarda tarif edilmesine rağmen fare ve koyunlarda da uygulanmıştır. Anestezi altındaki hayvanlarda barsak geçişini bozmaksızın çekumun standart bir iplik ile bağlanması ve daha sonra bağlanan kısmın standart ölçüdeki bir enjektör iğnesi ile bir veya iki kez delinmesi esasına dayanır. Gaita geçişi devam eder. Operasyon sonrasında karın boşluğu kap atılarak hayvanlara ağırlıklarına göre cilt altına sıvı verilir (resusitasyon). Oluşan sistemik inflamasyon tablosu hayvan türüne, hayvanın aç veya tok olmasına , delme amacıyla kullanılan iğnenin çapına, delme sayısına, farklı seviyelerde çekum bağlanmasına, barsak geçişinin durmasına , resusitasyon amacıyla sıvı veriliş şekline göre değişebilir (16).

    Zymosan ile oluşturulan çoklu organ yetmezliği ve SIRS

    Zymosan Saccharomyces cerevisiae mantarının hücre duvarından elde edilir. Yapı olarak %73 polisakkarit, %15 protein, %7 lipid ve çeşitli inorganik yapılar ihtiva eder. Deney hayvanlarına verilmesini takiben birçok inflamatuar mediatörün açığa çıkışına ve uzamış inflamasyon yanıtına neden olur. LPS verilerek veya CLP ile oluşturulan modellerin aksine zymosan daha uzun dönemli, üç fazlı inflamasyon tablosu ortaya çıkarır. Kronik çalışmalar için uygun bir modeldir. 0.8-1.0 mg/g (vücut ağırlığı) dozda uygulandığında birinci fazda akut peritonit ve ölümler, ikinci fazda nisbi düzelme, üçüncü fazda ise yaygın sistemik inflamasyonu takiben çoklu organ yetmezliği ve beraberinde ölümler gözlenir. Enfeksiyonun ön planda olmadığı kronik, yaygın sistemik inflamatuvar yanıtın incelenebileceği deneysel bir modeldir (17).

    5. Deneysel SIRS hayvan modellerinde, NO ile ilişkili bazı bulgular​​​​​​​

    SIRS deneysel modellerinde mezenterik iskemi gözlenir


    Zymosan ve düşük dozlarda endotoksin ile oluşturulan deneysel hayvan modellerinde, mezenterik damar yatağında iskemi oluşmakta ve damarsal rezistans artmaktadır. Bu durum yaygın vazodilatasyona bağlı hipotansiyon ile karakaterize septik şok tablosu ile çelişmektedir. Mezenterik damar yatağında rezistans artışının L-arjinin-nitrik oksit yolağı ile ilişkisi tartışmalıdır. L-NAME gibi non-selektif NOS inhibitörleri, L-canavanine gibi selektif iNOS inhibitörleri hasarı etkilemezken, diğer selektif iNOS inhibitörü aminoguanidin bu artışı önlemektedir. Ayrıca endotelin reseptör antagonisti bosentan da rezistans artışını önlemektedir (10, 18).

    İleri evre SIRS’da vazokonstriktörlere karşı vasküler cevapsızlık ve hipotansiyon oluşur​​​​​​​

    Enfeksiyona bağlı SIRS’ın ileri safhalarında septik şok tablosu ortaya çıkar ve hipotansiyon ile karakterize progresif dolaşım yetmezliği gelişir. Bu olayın devamında oluşan tablo terminal septik şok olarak adlandırılır ve sistolik kan basıncının 90 mmHg’dan az olduğu, hastaların sıvı ve vazoaktif ilaçlarla tedaviye yanıt vermedikleri durum olarak kabul edilir (katekolaminlere vasküler hipore-aktivite). Düşük doz LPS sonrası iNOS aktivitesinin aminoguanidin ile blokajıin vivoşartlarda vasküler cevapsızlık ve hipotansiyonun oluşumunu önler (12).

    SIRS’da barsak duvarından bakteriyel translokasyon gözlenir

    Deneysel hayvan modellerinde, düşük dozlarda endotoksin veya zymosan uygulanması sonrasında, barsak duvarından bakteriyel translokasyon gözlenir. Barsak dokusunun fizyolojik bariyer fonksiyonunun barsak lümenin içeriği ile doku kan akımına bağımlı olduğu bilinmektedir. SIRS’da gözlenen ölçüde şiddetli mezenterik rezistans artışına bağlı barsak iskemisinin barsak duvarının bütünlüğünü bozması ve lümende bulunan fırsatçı mikroorganizmalann dolaşıma geçmesi mümkündür (19). Bu hipotezin doğru olduğu deneysel olarak çok düşük dozda endotoksin verilmesi sonucu mezenterik lenf nodları dalak, karaciğer ve sistemik dolaşımda canlı koloni oluşturabilir bakterilerin bulunduğunun gösterilmesi ile kanıtlanmıştır. Benzer şekilde bu durum iNOS blokörü aminoguanidin ön tedavisi ile engellenebilir (20).

    Düşük doz endotoksin ile oluşturulan SIRS’da, endotoksin ön-tedavisi, daha sonraki yüksek dozun yapacağı hasarı arttırır​​​​​​​

    Düşük doz endotoksin ön tedavisi ile endotoksinin bazı etkilerine karşı "tolerant" hale getirilmiş farelerin, aradan bir kaç gün geçtikten sonra uygulanan yüksek doz endotoksinin etkilerine daha dayanıklı hale gelmeleri beklenebilir. Düşük doz endotoksin ön tedavisi görmüş farelere dört gün sonra yüksek doz endotoksin uygulandığında mezenterik kan akımlan kontrol grubuna oranla daha da düşük seviyeye inmiştir. Endotoksinin normalde oluşturduğu barsak iskemisi daha da şiddetlenmiştir. Bu sonuçlar, düşük doz endotoksin öntedavisinin daha sonraki inflamasyon yanıtı için koruyucu olmadığını göstermektedir (11, 19).

    SIRS’da çeşitli orgnlarda histopatolojik hasar oluşur​​​​​​​

    Zymosan, düşük dozlarda endotoksin veya CLP ile oluşturulan deneysel SIRS modellerinde morfolojik olarak dokularda hasar oluşmaktadır (10,18,21). Böbrek, akciğer, karaciğer, dalak gibi organlarda gözlenen hasarı genelde parankim harabiyeti, hemokonjesyon, inflamatuvar lenfositik infiltrasyon ile karakterize olan ağırlık artışı oluşturmaktadır. Ayrıca karaciğere özgü "spotty nekroz" ve dalağa özgü "kapsül içine kanama" da gözlenebilir. Tüm bu patolojik değişikliklerin L-arjinin-nitrik oksit yolağı ile ilişkisi tartışmalıdır. L-NAME gibi nonselektif NOS inhibitör-leri, L-canavanine gibi selektif iNOS inhibitörü has arı etkilemezken, diğer selektif iNOS inhi-bitörü aminoguanidin organ hasarını önle-mektedir. Ayrıca endotelin reseptör antago-nisti bosentan varlığında da organ hasarı tamamen ortadan kalkmaktadır.


    İleri safha SIRS yüksek mortalite ile seyreder

    SIRS’ın ileri safhalarında gelişecek olan septik şok %30-90 gibi yüksek mortalite oranıile seyreder (9). SIRS ve septik şokta sağ-kalım (survival) çalışmalarında NO blokajı erken dönemde yaşam oranını artırırken, uzun dönemde faydasız bulunmuştur (15). Özellikle deneysel septik şok modellerinde erken hiperdinamik fazda NOS blokajı, geç hipodinamik fazda endotelin reseptör blokajıyeni bir tedavi yaklaşımı olarak tanımlanmıştır (15,22,23)

    Literatürde SIRS ve septik şok konularında NO ile ilişkili yapılan deneysel çalışmaların sonuçları arasında farklılıklar mevcuttur. Bunun nedeni kullanılan hayvanlar (tür farkı) ve modeller, NOS inhibitörlerinin dozu ve tipi, özellikle NOS inhibitörlerinin uygulama zamanları arasındaki farklılıklarla açıklanabilir. Sistemik inflamasyon ve septik şokta NO’nun rolü hakkında çalışmalar devam etmektedir.

    Teşekkür

    Bu metinde özetlenen “Sistemik İnflamatuvar Yanıt Sendromu-septik şok” ile ilgili bulguların büyük bölümü, kendi laboratuvarlarımızda 1995 yılından bu yana devam eden deneysel çalışmaların sonuçlarına dayanmaktadır. Halen bu konulardaki çalışmalarımızın beraber devam ettiği Prof. Dr. M. Oğuz Güç, Dr. Nadir Ulu’ya ve diğer emeği geçen eski çalışma arkadaşlarıma teşekkür ederim. Doç. Dr. Alper B. İskit, Türkiye Bilimler Akademisi Genç Bilim İnsanlarını Ödüllendirme Programı (TUBA-GEBİP) tarafından desteklenmektedir (EA-TUBA-GEBIP/2001-2-11).

    KAYNAKLAR

    1. Coleman, J.W ., 2001. Nitric oxide in immunity and inflammation. Int. Immunopharmacol. 1(8), 1397-1406.

    2. Moncada, S., Palmer, R.M.J., Higgs, E.A., 1991. Nitric oxide: physiology, pathophysiology and pharmacology. Pharmacol. Rev. 43, 109-143.

    3. Schulz, R., Nava, E., Moncada, S.,1992. Induction and potential biological relevance of a Ca2+ independent nitric oxide synthase in the myocardium. Br. J. Pharmacol. 105, 575-580.

    4. Iskit, A.B., Guc, M.O, Ilhan, M., 1997. L-canavanine and dexamethasone attenuate endotoxin-induced suppression of ischaemia-reperfusion arrhythmias. Eur. J. Pharmacol. 326, 183-190.

    5. Lipton, S. A., Choi, Y-B., Pan, Z-H., Lei, S. Z., Chen, H-S. V., Sucher, N. J., Loscalzo, J., Singel, D. J., Stamler, J. S., 1993. A redox-based mechanism for the neuroprotective and
    neurodestructive effects of nitric oxide and related nitroso-compounds. Nature 364, 626-632.

    6. Gross, S.S., Wolin, M.S., 1995. Nitric oxide: Pathophysiological mechanisms. Annu. Rev. Physiol. 57, 737-769.

    7. Beckman, J.S., Beckman, T.W., Chen, J., Marshall, P.A., Freeman, B.A., 1990. Apparent hydroxyl radical production by peroxynitrite: Implications for endothelial injury from nitric oxide and superoxide. Proc. Natl. Acad. Sci. USA 87,1620-1624.

    8. Szabo, C.,1998. Role of poly (ADP-ribose) synthase in inflammation. Eur. J. Pharmacol. 350,1-19.

    9. Rangel-Frausto, M.S., Pittet, D., Costigan, M., Hwang, T., Davis, C., Wenzel, R.P., 1995. The natural history of the systemic inflammatory response syndrome (SIRS). J. Am. Med. Assoc.273, 117-123.

    10. Iskit, A.B., Sungur, A., Gedikoglu, G., Guc, M.O., 1999. The effects of bosentan, aminoguanidine and L-canavanine on mesenteric blood flow, spleen and liver in endotoxaemic mice. Eur. J. Pharm acol. 379, 73-80.

    11. Baykal, A., Iskit, A.B., Kaynaroglu, V., Guc, M.O., Sayek, I., Sanac, Y., 1999. Effects of adrenaline or endotoxin tolerance states on mesenteric blood flow in endotoxaemia. Aus. N.Z.J. Surg 69, 134-137.

    12. Kavuklu, B., Iskit, A.B., Guc, M.O., Ilhan, M., Sayek, I., 2000. Aminoguanidine atte nuates endotoxin-induced mesenteric vascular hyporeactivity. Br. J. Surg.87, 448-453.

    13. Baykal, A., Kavuklu, B., Iskit, A.B., Guc, M.O., Hascelik, G., Sayek, I., 2000. An experimental study of the effect of nitric oxide inhibition on mesenteric blood flow and interleukin-10 levels in lipopolysaccharide. World. J. Surg. 24(9), 1116-1120.

    14. Baykal, A., Iskit, A.B., Hamaloglu, E., Guc, M.O., Hascelik, G., Sayek, I., 2000. Melatonin modulates mesenteric blood flow and TNF alfa concentrations after lipopolysaccharide challenge. Eur. J. Surg. 166, 722-727.

    15. Iskit, A.B., Guc, M.O., 2001. The timing of endothelin and nitric oxide inhibition affects survival in a mice model of septic shock.Eur. J. Pharmacol. 414, 281-287.

    16. Baker, C.C., Chaudry, I.H., Gaines, H.O., et al., 1983. Evaluation of factors affecting mortality rate after sepsis in a murine cecal ligation and puncture model. Surgery 94(2), 331-335.

    17. Volman, T.J., Hendriks, T., Goris, R.J., 2005. Zymosan-induced generalized inflammation: experimental studies into mechanisms leading to multiple organ dysfunction syndrome. Shock 23(4), 291-297.

    18. Tanriverdi, P., Yuksel, B.C., Rasa, K., Guler, G., Iskit, A.B., Guc, M.O., Korkmaz, A., 2005. The effects of selective nitric oxide synthase blockers on mesenteric blood flow, organ injury and survival induced by zymosan. J. Surg. Res. 124(1), 67-73.

    19. Baykal, A., Iskit, A.B., Kaynaroglu, V., Guc, M.O., Hascelik, G., Sayek, I., Sanac, Y., 2000. Adrenaline tolerance does not prevent bacterial translocation in a murine burn model. Int. J. Surg. 85(1), 18-22.

    20. Kavuklu, B., Agalar, C., Guc, M.O., Saye k, I., 1998. Evidence that aminoguanidine inhibits endotoxin-induced bacterial translocation. Br. J. Surg. 85(8),1103-1106.

    21. Iskit, A.B., Senel, I., Sokmensuer, C., Guc, M.O., 2004. Endothelin receptor antagonist bosentan improves survival in a murine caecal ligation and puncture model of septic shock. Eur. J. Pharmacol. 506, 83-88.

    22. Iskit, A.B., Guc, O., 2003. Effects of endothelin and nitric oxide on organ injury, mesenteric ischemia, and survival in experimental models of septic shock. Acta. Pharmacol. Sin. 24(10), 953-957.

    ​​​​​​​23. Iskit, A.B., Guc, M.O., 2004. A new therapeutic approach for the treatment of sepsis. Med. Hypotheses 62(3), 342-345.
    Yorum yap


    • #17
      Nitrik oksit sentaz ve nitrik oksit ölçüm yöntemlerine giriş

      Doç. Dr. Bahar TUNÇTAN

      Giriş

      Nitrik oksit (NO), hayvanlar ve insanlarda önemli etkileri olan atmosferik bir gaz ve serbest radikaldir. Memeli hücrelerinin endotel kökenli gevşetici bir faktör (endothelium-derived relaxing factor, EDRF) sentezlemeleri ilk kez 1980’de gösterilmiştir(11). 1987’de, EDRF ve NO’nun benzer etkiler oluşturması nedeni ile bu iki maddenin aynı olduğu ya da EDRF’nin yapısında bir NO grubu olabileceği ileri sürülmüştür (17,30). Daha sonraları yapılan çalışmalarda, bu inorganik gazın fizyolojik bir haberci olarak sinir, immün, gastrointestinal ve kardiyovasküler sistemlerde önemli bir düzenleyici molekül olduğu gösterilmiştir. Normal fonksiyonlara aracılık etmesinin yanısıra septik şok, hipertansiyon, felç ve nörodejeneratif hastalıklar gibi patofizyolojik durumlarda rolü olduğunun gösterilmesi ile NO’nun önemi daha da artmıştır. 1987’den günümüze kadar hayvan ve insanlarda NO ile ilgili olarak yapılan çalışmaların sayısı 70.000'e yaklaştığından, biyolojik çalışmalarda NO sentaz (NOS) enzim mRNA/protein ekspresyonu ve/ veya aktivitesi ile NO'nun etkilerinin belirlenmesi ile ilgili olarak hızlı ve basit ölçüm yön-temlerinin geliştirilmesine ve halen kullanılan yöntemlerin iyileştirilmesine gerek duyulmaktadır.

      NOS ve NO ölçümünde kullanılan yöntemler

      Günümüzde NOS enzimlerinin yerleşiminin gösterilmesi için kullanılan yöntemler arasında immünohistokimyasal ve in situ hibridizas-yon yöntemleri bulunmaktadır6,43. NOS en-zimlerinin mRNA ekspresyonu için kullanılan yöntemler arasında ise ters transkripsiyon polimeraz zincir reaksiyonu, Northern-blot ve ribonükleaz-koruma analizi gibi yöntemler kullanılmaktadır (25,35). NOS enzimlerinin protein ekpsresyonu için de en sık kullanılan yöntem Western-blot analizidir(40). Diğer yandan, biyolojik sistemlerde NO konsantrasyonlarının ölçümü, NO’nun in vivo olarak düşük miktarlarda oluşması ve oluştuktan sonra hızla moleküler oksijen ile etkileşerek reaksiyona girmesi ölçümünü güçleştirmektedir. NO'nun yarılanma ömrünün çok kısa olması da (kan gibi fizyolojik ortamlarda yarılanma ömrü 6-20 saniye kadar) bazal koşullarda NO ölçümünü güçleştirmektedir(9,28). Son yıllarda NOS ve NO ölçümünün doğrudan, güvenilir, hızlı ve kolay bir şekilde yapılabilmesine olanak tanıyan yöntemler geliştirilmeye çalışılmaktadır.

      NOS aktivitesi ölçümü için kullanılan doğrudan olmayan yöntemler

      Biyolojik örneklerde guanilil siklaz(20) ve NOS aktivitesinin ölçümü(46), damar ve/veya damar dışı düz kas preparatlarının kullanıldığı biyo-analiz(11,45), trombosit agregasyonunun inhibisyonu(18,45) ve L-arjinin(34), siklik guanozin monofosfat (siklik GMP)(17,22), L-sitrülin(16,19,41), biyop-terin(15) ve nitrit/nitrat gibi NO metabo lizmasının dayanıklı son ürünlerinin ölçülmesi(1,9,10,12, 28,41,42,44) NO’nun varlığı ile ilgili olarak bilgi vermektedir. Ayrıca, NO donörleri(3,45), NOS inhibitörleri(3,36) ve guanozin trifosfat (GTP) siklohidrolaz I inhibitörleri(14) gibi NO oluşumu üzerinde etkili maddelerin kullanılması NO oluşumu hakkında bir tahmin sağlamaktadır. Bu yöntemlerden hepsinin spesifiklikleri farklıdır ve NO oluşumu ile ilgili olarak doğrudan olmayan bilgiler sağlamaktadır. Sadece sGMP veya sitrülin konsantrasyonlarının ölçümü, NO miktarları ile ilgili olarak kantitatif bir bilgi sağlayabilir(8,19,22). NO ölçümü için kullanılan bu yöntemlerin özellikle L-arjinin analogları kullanıldığında yanlış bilgiler elde edilebileceği de bildirilmiştir(2,5,13,31).

      NOS aktivitesi ölçümü için kullanılan doğrudan yöntemler

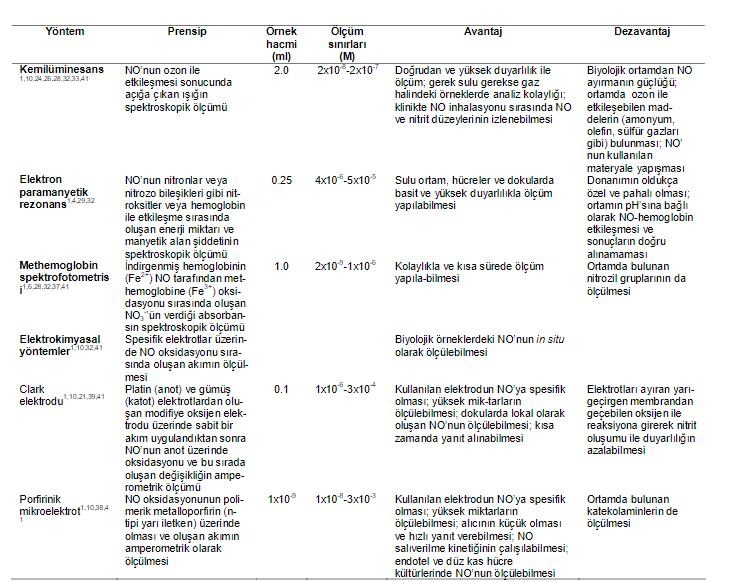
      NO’nun doğrudan olarak gerçeğe yakın konsantrasyonlarının ölçümüne olanak sağlayan yöntemler bulunmaktadır. NO ölçümü için sıklıkla kullanılan aletli yöntemler spektroskopik ve elektroanalitik yöntemlerdir. Bu yöntemlerden bazıları Tablo 1’de verilmiştir. Bu yöntemlerden başka florometrik(28,42), gaz kromatografisi(1,10), gaz kromatografisi-kütle spektroskopisi(1,10), yüksek basınçlı sıvı kromato-grafisi(8, 10,33,41,47) ve kapiler elektroforez(10) gibi yöntemler de kullanılmaktadır.

      Tablo 1. NO’nun doğrudan ölçümü için kullanılan yöntemlerden bazılarının prensipleri, gerekli biyolojik örnek hacmi, ölçüm sınırları, avantaj ve dezavantajları.


      Kaynaklar

      1. Archer S. Measurement of nitric oxide in biological models. FASEB J. 7, 349-360, 1993.

      2. Archer SL, Hampl V. NG-monomethyl-L-arginine causes nitric oxide synthesis in isolated arterial rings: trouble in paradise. Biochem. Biophys. Res. Commun. 188(2), 590-596, 1992.

      3. Assreuy J, Cunha FQ, Liew FY, Moncada S. Feedback inhibition of nitric oxide synthase activity by nitric oxide. Br. J. Pharmacol. 108, 833-837, 1993.

      4. Bachmann S, Mundel P. Nitric oxides in the kidney: synthesis, localization and function. Am. J. Kidney Dis. 24(1), 112-129, 1994.

      5. Bogle RG, Moncada S, Pearson CD, Mann GE. Identification of inhibitors of nitric oxide synthase that do not interact with the endothelial cell L-arginine transporter. Br. J. Pharmacol. 105, 768-770, 1992.

      6. Cattel V, Mosley K. Immunohistochemical localization of NOS isoforms. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 181-189, 1998.

      7. Cattell V, Cook T, Moncada S. Glomeruli synthesize nitrite in experimental nephrotoxic nephritis. Kidney Int. 38, 1056-1060, 1990.

      8. Cunningham JM, Rayne RC. Radiochemical measurement of NOS activity by conversion of [14C]L-arginine to citrulline using HPLC separation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 75-81, 1998.

      9. Dejam A, Hunter C, Schechter AN, Gladwin MT. Emerging role of nitrie in human biology. Blood Cells, Molecules, and Diseases 32, 423-429, 2004.

      10. Ellis G, Adatia I, Yazdanpanah M, Makela SK. Nitrite and nitrate analyses: A clinical Biochemistry perspective. Clin. Biochem. 31, 195-220, 1998.

      11. Furchgott RF, Zawadzki JV. The obligatory role of endothelial cells in the relaxation of arterial smooth muscle by acetylcholine. Nature 288, 373-376, 1980.

      12. Green LC, Wagner DA, Glogowski J, Skipper PL, Wishnok JS, Tannenbaum SR. Analysis of nitrate, nitrite, and [15N]nitrate in biological fluids. Anal. Biochem. 126, 131-138, 1982.

      13. Greenberg SS, Xie J, Spitzer JJ ve ark. Nitro containing L-arginine analogs interfere with assays for nitrate and nitrite. Life Sci. 57, 1949-1961, 1995.

      14. Hatakeyama K, Yoneyama T. A sensitive assay for the enzymatic activity of GTP cyclohydrolase I. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 265-272, 1998.

      15. Hatakeyama K. Measurement of biopterin and the use of inhibitors of biopterin biosynthesis. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 251-264, 1998.

      16. Hecker M, Mitchell JA, Harris HJ, Katsura M, Thiemermann C, Vane JR. Endothelial cells metabolize NG-monomethyl-L-arginine to L-citrulline and subsequently to L-arginine. Biochem. Biophys. Res. Commun., 167, 1037-1043, 1990.

      17. Ignarro LJ, Buga GM, Wood KS, Byrns RE, Chaudhuri G. Endothelium-derived relaxing factor produced and released from artery and vein is nitric oxide. Proc. Natl. Acad. Sci. U.S.A. 84, 9265-9269, 1987.

      18. Kita Y, Hirasawa Y, Maeda K, Nishio M, Yoshida K. Spontaneous nitric oxide release accounts for the potent pharmacological actions of FK409. Eur. J. Pharmacol. 257, 123-130, 1994.

      19. Knowles RG, Salter M. Measurement of NOS activity by conversion of radiolabeled arginine to citrulline using ion-exchange separation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 67-73, 1998.

      20. Kondo K, Mitchell JA, de Nucci G, Vane JR. Simultaneous measurement of endothelium-derived relaxing factor by bioassay and guanylate cyclase stimulation. Br. J. Pharmacol. 98, 630-636, 1989.

      21. Kröncke K-D, Kolb-Bachofen V, Berschick B, Burkart V, Kolb H. Activated macrophages kill pancreatic syngeneic islet cells via arginine-dependent nitric oxide generation. Biochem. Biophys. Res. Commun. 175(3), 752-758, 1991.

      22. Laychock SG. Determination of NOS activity using cyclic-GMP formation. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 93-100, 1998.

      23. Laychock SG. Determination of NOS activity using cyclic-GMP formation. In: Methods in Molecular Biology: Nitric Oxide Protocols,
      Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 93-100, 1998.

      24. Majid DSA, Williams A, Navar LG. Inhibition of nitric oxide synthesis attenuates pressure-induced natriuretic responses in anaesthetized dogs. Am. J. Physiol. 264, F79-F87, 1993.

      25. Martin-Sanz, Bosca L. Measurement of NOS mRN A by Northern blotting and the ribonuclease-protection assay. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 163-170, 1998.

      26. Michelakis ED, Archer SL. The measurement of NO in biological systems using chemiluminesence. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 111-127, 1998.

      27. Muller CD, Schuber F. Fluorometric determination of polystyrene latex: application to the measurement of phagosomes and phagocytosis. Anal. Biochem. 152, 167-171, 1986.

      28. Nagano T. Practical ethods for detection of nitric oxide. Luminescence 14, 283-290, 1999.

      29. Ohnishi ST. Measurement of NO using electron paramagnetic resonance. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 129-153, 1998.

      30. Palmer RMJ, Ferrige AG, Moncada S. Nitric oxide release accounts for the biological activity of endothelium-derived releasing factor. Nature 327, 524-526, 1987.

      31. Peterson DA, Peterson DC, Archer S, Weir EK. The nonspecifity of specific nitric oxide syntheses inhibitors. 187, 797-801, 1992.

      32. Radomski MW, Palmer RM, Moncada S. Endogenous nitric oxide inhibits human platelet adhesion to vascular endothelium. Lancet ii, 1057-1058, 1987.

      33. Rassaf T, Feelisch M, Kelm M. Circulating NO pool: Assessment of nitrite and nitroso species in blood and tissues. Free Radic. Biol. Med. 36, 413-422, 2004.

      34. Reckelhoff JF, Kellum JA, Blanchard EJ, Bacon EE, Wesley AJ, Kruckeberg WC. Changes in nitric oxide precursor, L-arginine, and metabolites, nitrate and nitrite, with aging. Life Sci. 55(24), 1895-1902, 1994.

      35. Reiling N, Ulmer AJ, Hauschildt S. measurement of eNOS and iNOS mRNA expression using reverse transcription polymerase chain reaction. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 155-161, 1998.

      36. Russell RJ. Use of arginine analogs as inhibitors of nitric oxide synthase in rat aortic rings. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 243-250, 1998.

      37. Salter M, Knowles RG. Assay of NOS activity by the measurement of conversion of oxyhemoglobin to methemoglobin by NO. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 61-65, 1998.

      38. Schmidt HHHW, Warner TD, Ishii K, Sheng H, Murad F. Insulin secretion from pancreatic β cells caused by L-arginine-derived nitrogen oxides. Science 255, 721-723, 1992.

      39. Schmidt K, Mayer B. Determination of NO with a Clark-type electrode. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 101-109, 1998.

      40. Smith FS, Titheradge MA. Detection of NOS isoforms by Western-blo analysis. In: Methods in Molecular Biology: Nitric Oxide
      Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 171-180, 1998.

      41. Tarpey MM, Fridovich I. Methods of detection of vascular reactive species. Nitric oxide, superoxide, hydrogen peroxide, and peroxynitrite. Circ. Res. 89, 224-236, 2001.

      42. Tarpey MM, Wink DA, Grisham MB. Methods for detection of reactive metabolites of oxygen and nitrogen: In vitro and in vivo considerations. Am. J. Physiol. Regul. Integr. Comp. Physiol. 286, R431-R444, 2004.

      43. Taylor GM, Cook HT. A practical protocol for the demonstration of NOS using in situ hybridization. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 191-204, 1998.

      44. Titheradge MA. The enzymatic measurement of nitrate and nitrite. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 83-91, 1998.

      45. Tullett JM, Rees DD. Use of NO donors in biological systems. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 205-214, 1998.

      46. Weinberg JB, Misukonis MA, Shami PJ, Mason SN, Sauls DL, Dittman WA, Wood ER, Smith GK, McDonald B, Bachus KE, Haney AF, Granger DL. Human mononuclear phagocyte inducible nitric oxide synthase (iNOS): analysis of iNOS mRNA, iNOS protein, biopterin, and nitric oxide production by blood monocytes and peritoneal macrophages. Blood 86(3), 1184-1195, 1995.

      47. Wennmalm A, Benthin G, Edlund A, Jungersten L, Kieler-Jensen N, Lundin S, Westfelt UN, Peterson A-S, Waagstein F. Metabolism and excretion of nitric oxide in humans. An experimental and clinical study. Circ. Res. 73, 1121-1127, 1993.

      Yorum yap


      • #18
        Nitrik oksit sentaz yerleşimlerinin immünohistokimyasal yöntemler ile gösterilmesi

        Prof. Dr. Hakan GÜRDAL, Prof. Dr. Alp CAN

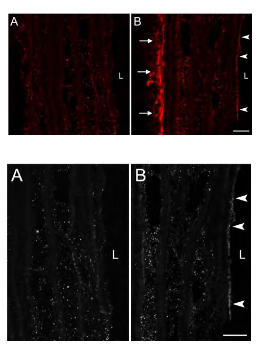
        eNOS, iNOS ve nNOS olmak üzere her üç izoform immunohistokimyasal ve immunositokimyasal yöntemlerle görüntülenebilmektedir.

        Örneklerin hazırlanması (fiksasyon ve kesit hazırlanması (sectioning))

        İmmunohistokimyasal yöntemlerde öncelikle uygun bir fiksasyon ve kesitin (section) elde edilmesi gerekmektedir. Hücre için bu kolay olabilir fakat hücreler öncelikle cam bir lamel üzerine oturtulmalı ve fiksasyon yapılmalıdır. Dokularda ise dokular elde edilirken fizyolojik bir tamponu takiben fiksayo nda kullanılac ak solusyo nla (%3.5 parformaldehit (PFA)) perfuze edilebilir. Dokular çıkarıldıktan sonra fiksasyona (% 3.5 PFA, 4 saat) devam edilir. Tablo 1 de örnek fiksatifler ve kesit alma teknikleri verilmiştir. Kriyokesitlerin (frozen) alınımı durumunda örnekler kriyoprotektan özelliği olan 1.2M sukroz ve %0.5 PFA içeren solusyon içine alınabilirler. Daha sonra çeşitli kalınlıkta (8 μM) kriyokesitlerin alınımı mümkündür.
        Fiksatif Frozen Parafin
        nNOS YOK + +
        nNOS PFA, Aseton, PLP + +
        eNOS YOK + +
        eNOS PFA, Aseton, Etanol + +
        iNOS YOK + +
        iNOS PFA, Aseton, PLP, Formolin + +
        PLP; periodat-lisin-paraformaldehit

        İmmunişaretleme (immunostaining, immu-nolabeling)

        Örnekler öncelikle uygun bir serum ve protein içeren solusyon ile inkube edilir ve yıkanırlar (Bloke etme, Blocking). Bu aşama NOS proteinleri için kullanılacak antikorların non-spesifik bağlanmalarını engellemeyi amaçlamaktadır. Hücre içi proteinlerin saptanması için hücrelerin permeabilize olması gerekmektedir. Kullanılan fiksasyon solusyonları ve TritonX-100, Tween-20 veya saponin gibi maddeler bunu sağlamaktadır. Örnek solusyon PBS içinde, %2 albumin (BSA), %2 toz süt, %2 normal keçi serumu (eşek, tavşan Biz çalışmalarımızda konfokal mikroskopi kullanıyoruz (Zeiss LSM-510). Fakat fluresan mikroskopisi ile preparatlar değerlendirilebilir serumuda olabilir, kullanılacak primer ve sekonder antikorlara ve ön deneylere göre belirlenmelidir), 0.1 M glisin, % 0.01 Triton X-100. Bu solusyon ile inkübasyon süresi ön deneylerle belirlenmelidir (örneğin 12-16 saat 4º C). Bu işlemden sonra preparatlar PBS ile 1-3 kez yıkanabilir ve primer antikorlar ile işaretlenmeye geçilebilir. Preparatlar uygun bir fizyolojik tamponun (PBS) içinde uygun dilusyonlar ile hazırlanmış primer antikor ile inkübe edilmelidirler. Primer antikorun dilusyonu oldukça önemlidir ve mutlaka farklı dilusyonlar ile ön deneyler yapılmalıdır (1:100-1000). 1:50, 1:100 gibi dilüsyonlarda nonspesifik işaretleme olasılıkları yüksektir. Bu tür işaretlemelerde antikorları spesifik olarak bloke eden peptidler ile işaretleme kontrol edilebilir. Primer antikor ile preparatlar 1-2 saat oda sıcaklığında veya 12-16 saat 4º C'de bekletilebilir. İnkübasyo n sonrası pre-paratlar PBS ile 2-3 kez yıkanır. Bu işlemden sonra bir prob (florasan, enzim, metal) ile işaretli primer antikora karşı geliştirilmişse konder antikor ile inkübasyona geçilir. Örneğin primer antikoru tavşan da geliştirilmiş bir NOS antikoru kullanıldığında Cy3 goat antirabbit IgG (1:100-500) antikoru ile 2 saat 37º C'de preparatlar bekletilebilir. Sekonder antikorun dilusyonuda kontrol edilmelidir. Bu antikorda nonspesifik bağlanmalara neden olabilir.
        Eksitasyon (nm) Emisyon (nm)
        Cy3 575 605
        Cy5 640 705
        FITC 490 525
        Rhodamine 540-560 580
        Teksas Kırmızısı 590 615
        Fluorescein 492 520
        Bu işlemden sonra preparatlar mikroskopi ile incelemeye hazırdır. Eğer bir iki gün beklenilecek ise peparatlar 25 mg/ml sodyum azid içeren glycerol/PBS (1:1) solusyonunda bekletilebilir. Topografik oriyantasyon açısından hücre çekirdekleri Hoechst 33258 gibi boyalarla boyanabilir.

        Eğer sekonder antikor bir enzim ile işaretlenmişse ışık mikroskopisi, bir metal ile (altın) işaretlenmiş ise electron mikroskopisi kullanmak mümkündür.

        Kaynaklar

        1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed.Michael A. Titherradge Hum an Press Inc. Totowa NJ.

        2. Gürdal, H, et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. P harm acol (basımda).


        Örnek: Damar düz kası eNOS.
        Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 13:05 ) değiştirilmiştir.

        Yorum yap


        • #19
          Nitrik oksit sentaz mRNA ekspresyonunun ters transkriptaz polimeraz zincir reaksiyonu yöntemi ile belirlenmesi

          Prof. Dr. Hakan GÜRDAL

          eNOS, iNOS ve nNOS bazı durumlarda dokularda düşük düzeyde bulunmaları nedeniyle saptanamazlar. RT-PCR ile çok düşük düzeylerdeki NOS mRNA’ları saptanabilir. Bu teknik için öncelikle doku ve hücrelerden total RNA veya polyA+-mRNA izolasyonu gerekmektedir.

          RNA izolasyonu

          Burada oldukça klasik olan RNA izolasyon yöntemi anlatılmayacaktır. Bazı genel özelliklerden bahsedilecektir. RNA izolasyonu için genellikle başlıca iki ana yöntem kullanılmaktadır. Bunlardan birisi bilinen klasik Chomcynski ve Sacchi tarafından tanımlanan yöntemdir. Diğeri ise doku ve hücrelerden elde edilen homojenatlardaki RNA’ların RNA bağlama kapasitesi olan çeşitli kolon materyallerine bağlanması ve bu kolonlardan RNA'ların toplanması yöntemidir. Bu yöntemler sırasında dikkat edilecek hususlar RNA yıkılımını azaltıcı (RNAse inhibisyonu) ve DNA kontaminasyonunu azaltıcı tedbirlerin alınmasıdır. Özellikle RNA izolasyonu sırasında veya sonrasında örnekler DNAse enzimi ile inkübe edilerek DNA kontaminasyonu engellenmelidir. PolyA+-mRNA izolasyonu ise genellikle total RNA elde edildikten sonra polyA+-mRNA bağlayan kolon materyalleri kullanılarak yapılmaktadır. Tüm bu izolasyonlar için çeşitli kitler mevcuttur. Piyasadaki bilinen bu kitlerin bir çoğu optimize edilmiş ve iyi sonuçlar vermektedir. 1x10⁶ hücreden veya 10-50 mg dokudan 10-20 μg RNA kolaylıkla elde edilebilir. Elde edilen RNA ların 260 ve 280 dalga boyundaki absorbsiyon oranlarının 1.8 ve 2.1 aralığında olması arzulanır. RNA’ ların bütünlüğü (integrity) denature agorose jel elktroforezi ile kontrol edilebilir. 28 S ve 18 S olmak üzere iki adet band görülmelidir. DNA kontaminasyonundan şüpheleniliyorsa alınan örnekte β-actin primeri kullanılarak PCR yapılır. Kontaminasyon yok ise herhangi bir ürün oluşmaz.

          RT- cDNA elde edilmesi

          RT-PCR uygulamasında tek adımlık uygulama ve iki aşamalı uygulama mümkündür. Tek adımlık uygulamada (RT ve PCR tek tüp içerisinde farklı zamanlamalar ile yapılır) ortama RNA (total 2-20 pmol/μl vey a poly (+) RNA, deoksinukleotid mix (hepsinden yaklaşık 200 μM), RNAse inhibitör, spesifik primerler (0.4-1 μM), reverse transcriptase enzimi, DNA polimeraz enzimi konulur (total hacim 50 μl), 3-25mM Mg2Cl ve gerekli tamponlar konulur.

          1. cDNA sentezi için örnekler 42-50° C 50-60 dk bekletilir (RT aşaması)

          2. RT enziminin inaktivasyo nu 94° C 2 dk

          3. 1-35 siklus 94° C 15 saniye, 55° C 30 saniye, 68° C 1 saniye (PCR aşaması)

          4. 68° C 1-5 dk bekleme ve 4° C örnekleri tutma.

          İki aşamalı RT-PCR’da ise öncelikle RT enzimi ile cDNA elde edilir. Daha sonra spesifik primerler ile PCR yapılır.

          1. Aşama: Ortama RNA (total 0.005-0.25 μg/μl), deoksinukleotid mix (hepsinden yak-laşık 500 μM), RNAse inhibitör, reverse transcriptase enzimi, (total hacim 30 μl), gerekli tamponlar konulur. cDNA sentezi için örnekler 42-50° C 50-60 dk bekletilir.

          2. Aşama: Bu aşamada ortama yukarıdaki cDNA örneğinden (2-5 μl), spesifik pirimerler, DNA polimeraz enzimi, deoksinukleotid mix (hepsinden yaklaşık 200-500 μM ) konulur.

          1. RT enziminin inaktivasyo nu 94° C 2 dk

          2. 1-35 siklus 94° C 15 saniye, 55° C 30 saniye, 68° C 1dk

          3. 68° C 5 dk bekleme ve 4° C örnekleri tutma.

          Burada verilen dereceler pirimerlere göre optimize edilmelidir. Ayrıca burada bazı basit protokoller verilmiştir; bazı ayrıntılı protokollerin uygulanması ve seçilmesi mümkündür (Touch-Down PCR gibi).

          NOS proteinleri için örnek primerler
          Sekans 5' > 3' Annealing Temp. cDNA bp
          eNOS sense CTG GCA AGA CCG ATT ACA CGA 60 450
          eNOS anti CGC AAT GT G AGT CCG AAA ATG
          eNOS sense GTG ATG GCG AAG CGA GTG AAG 61 422
          eNOS anti CCG AGC CCG AAC ACA CAG AAC
          iNOS sense TCG GAG GCA AAC AGC ACA TTCA 62 462
          iNOS anti GGG TTG GGG GTG TGG TGA TGT
          Kaynaklar

          1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed.Michael A. Titherradge Hum an Press Inc. Totowa NJ.

          2. Gürdal, H, et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. P harm acol (basımda).


          Örnek: eNOS
          Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 13:04 ) değiştirilmiştir.

          Yorum yap


          • #20
            Nitrik oksit sentaz mRNA ekspresyonunun Westwrn blot yöntemi ile analizi

            Prof. Dr. Hakan GÜRDAL, Doç. Dr. Bahar TUNÇTAN

            Doku ve hücrelerdeki NOS protein düzeyi spesifik antikorlar kullanılarak Western blot yöntemi ile saptanabilmektedir. Her üç farklı eNOS, iNOS ve nNOS için kros reaktivite vermeyen antikorları elde etmek mümkündür. Burada klasik yöntem olan elektroforez ve immunublot yöntemlerinin ayrıntıları anlatılmayacak bazı önemli ayrıntılar ele alınacaktır. Bu ölçümlerdeki en önemli safha NOS proteininin ölçüleceği örneklerin elde edilmesidir. Eğer dokulardan elde edilecek ise dokuların alınması esnasında dokular kandan iyice arındırılmalıdır. Gerekirse böbrek, karaciğer gibi bol kanlanan dokular bir tampon ile alınma esnasında damar yolu kullanılarak perfüze edilmeli ve ortamdaki kan uzaklaştırılmalıdır. Ayrıca hemoglobin kontaminasyonu mümkün olduğunca elimine edilmelidir. (bunlar yapılamıyorsa homojenizasyon sonrası kan ve hemoglobin uzaklaştırıcı diğer yöntemler kullanılmalıdır). Beyin, damar gibi dokularda hemoglobin bulaşma olasılığı olmamaktadır. Kan ve hemoglobin bulaşması homojenizasyondan örnekler hazırlandıktan sonra çok yüksek düzeyde protein elde edilmesine ve ölçümü yapılacak NOS proteinlerinin göreceli olarak ortamda az olmasına neden olmaktadır. Bu durum elektroforez esnasında örneklerin yüklenme miktarının kısıtlı olması nedeni ile ölçüm sınırının altında NOS proteininin yüklenmesine yol açmaktadır. Bunun diğer bir çözümü elektroforez esnasında yüklenebilecek protein miktarının artırılabilmesi olabilir (örneğin elektroforez için %5-8 poliakrilamit-jel kullanılabilir ve 130-160 μg protein yüklenebilir).

            Örneklerin hazırlanması

            Örnekler 100 mg doku veya 1x10⁶ hücre 1-3 ml (bu miktar ön deneylerle saptanmalıdır) homejanizasyon tamponu (HT) içinde homojenize edilebilir. Homojenizasyon cam-cam, ultraturraks, sonikasyon, hücrelerin ince uçlu şırıngadan geçirilmesi gibi yöntemlerle soğuk ortamda ve hızlı yapılmalıdır. NOS proteinleri sitozolde, hücre membranında ve hücre içi yapıların membranlarında bulunabilmektedir. HT içinde bir miktar deterjan olması membranlara bağlı NOS proteinlerinin serbest proteinler haline gelmesini sağlayacaktır. Yüksek santrifügasyon hızı ile (100.000Xg, 60 dk, sitozol) membranlar ve diğer hücre elemanları tamamen çöktürülerek supernatan alınır ve çözünür, serbest proteinler elde edilebilir. Bir diğer yöntemde daha düşük bir santrifügasyon ile (10.000-30.000xg, 30 dk) süpernatan alınır ve çözünür, serbest proteinler ile birlikte bazı hücre membranlarıda elde edilir. Bu iki yöntem de denenebilir. Eğer bir sistemde membranlara bağlı NOS miktarı çok ise ikinci yöntem denenmelidir.

            HT (pH 7.2): 320 mM sukroz, 10mM Tris-HCl, 1 mM EDTA, 1mM DTT, 10 μg/ml leupeptin, 2 μg/ml aprotinin, 1 mM phenylmethylsulfonyl fluoride.

            Bu tampona yukarıda değinildiği gibi deterjan eklenebilir (16 mM, (3-[(3-cholamidopropyl) dimethylammonio]-1-propane-sulfonate (CHAPS). Bu tampondan sukroz çıkarılabilir.

            Alınan supernatanlardan protein ölçülmeli ve hemen elektroforez yapılmayacak ise örnekler -70-80º C°de dondurulmalıdır. Bu örneklerden 20-130 μg aralığında protein kullanmak mümkündür. Yüksek miktarlarda protein (130-160 μg) yüklenecek ise jelin akrilamit yüzdesi düşürülebilir (%5 gibi). Bu aşamadan sonra elektroforez yapılarak proteinler ayrıştırılır. Daha sonra proteinler jelden blot kağıdına veya zarına (protein bağlama özelliği olan bir zar veya kağıt) transfer edilir.

            İmmunobloting

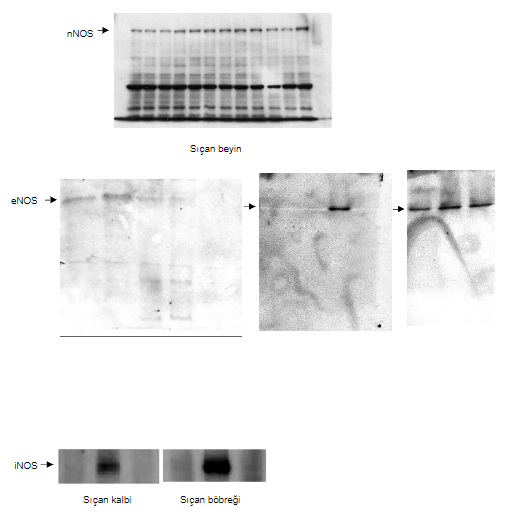
            Proteinleri içeren zarlar öncelikle uygun solusyon ile (süt ve protein içeren solusyon) inkübe edilir ve yıkanırlar (8-16 saat 4º C,Bloke etme, Blocking). Bu aşama NOS proteinleri için kullanılacak antikorların nonspesifik bağlanmalarını engellemeyi amaçlamak-tadır. Daha sonra Zarlar uygun bir tampon ile (PBS, Tris içeren) yıkanır ve primer antikor ile inkübasyona geçilebilir (1 saat oda sıcaklığı). Spesifik antikorlar eNOS için Santa Cruz, nNOS için Calbiochem ve iNOS için Transduction Lab. şirketlerinden elde edilen antikorlar tarafımızdan denenmiştir. Bu şirketler dışında Oxis, Sigma ve bazı diğer şirketlerinde antikorları bulunmaktadır. Firmalar kullanma klavuzlarında 1:1000 düzeyinde dilusyon önermektedirler fakat deneyimlerimiz sonucu eNOS ve nNOS için 1:3000-10.000 ve iNOS için 1:1000 dilüsyonlarının daha iyi oldukları ve daha az nonspesifik band verdikleri görülmüştür. Bu inkübasyondan sonra tekrar uygun bir tampon ile zarlar yıkanır ve sekonder antikorla inkübasyona geçilir (1 saat, oda sıcaklığı). Bu inkübasyondan sonra yıkama işlemi tekrar yapılır. Bandların saptanmasında ECL tekniği kullanılması oldukça kolay ve verimlidir. Burada da sekonder antikorların eNOS ve nNOS için 1:8000-10.000 ve iNOS için 1:1000 dilüsyonları iyi sonuç vermektedir. eNOS proteini 133 kd (120-140 kd), iNOS 130 kd (120-140 kd) ve nNOS 160 kD (150-170 kD) aralıklarında görülebilmektedir. Moleküler ağırlıkları yüksek olduğu için moleküler ağırlık standartları da ona göre seçilmelidir.

            Kaynaklar

            1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed. Michael A. Titherradge Hum an Press Inc. Totowa NJ.

            2. Gürdal H et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. Pharmacol (basımda).

            3. Tunçtan B et al. Inhibition by nitric oxide and cyclooxygenase of cytochrome P450 4A expression and activity contributes to endotoxin-induced hypotension in rats. Nitric Oxide: Biology and Chemistry (basımda) (2005).


            Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 13:02 ) değiştirilmiştir.

            Yorum yap


            • #21
              Nitrik oksit sentaz aktivitesinin L- arjinin L- sitrüline dönüşümü yöntemi ile ölçülmesi

              Prof. Dr. Hakan GÜRDAL

              NOS enzimi L-arginin, NADPH varlığında ve oksijen kullanarak NO, NADP+ ve sitrulin oluşumuna neden olur. Başka bir değiş ile NOS L-arginin L-sitrüllin dönüşüm reaksiyununu katalizler. Bu reaksiyon NOS inhibitörlerine duyarlıdır. Bu yöntem oldukça duyarlı bir ölçüm tekniğidir (0.7-50 pmo l/dk/g). Bu yöntem ile NO düzeyi ölçülmemekte NOS aktivitesi değerlendirilmektedir.

              NOS aktivitesinin ölçüleceği örnekler

              Bu yöntem canlı hücreler veya deney hayvanlarından elde edilmiş taze dokularda gerçek-


              leştirilebileceği gibi dondurulmuş (veya canlı) hücre, dokuların homojenizasyonu sonrası hazırlanan ve NOS proteinlerini içeren örneklerde de yapılabilmektedir.

              Çeşitli hücre serilerinde ve damar halkalarında

              [3H]L-arginin ile işaretleme


              Hücreler 6-12-24 kuyulu hücre kültür plakalarına eşit sayıda dağıtılmalıdır. Hücrelerin kültür ortamında yeterli sayıya ulaşmaları beklenmelidir (%80-95 konfluent, eğer kıyaslama yapılacaksa bu önemlidir, hücre sayısı kullanılan hücreye ve elde edilen yanıta göre ayarlanabilir). Hücreler 20 dk–3 saat 1 μCi/ml [3H]L-arginin bulunduran serumsuz hücre kültür vasatı (DMEM) ile CO2 inkübatöründe (37° C) bekletilebilir. İnkübasyon sonunda iki farklı yöntem ile deneye devam edilebilir.

              1. İnkübasyon sonunda kuyular yıkanır (ısıtılmış HEPES tamponu veya DMEM ile 3 kez yıkanmalı) ve (300-1000 μl) HEPES tamponu veya kültür vasatı eklenir.

              2. İnkubasyon sonunda yıkama yapılmaksızın deneye geçilir (bunun için ön deneyler yapılmalıdır).

              Bir sonraki aşamada NOS enzimi aktivasyonunu etkileyecek madde ortama eklenerek 10-60 dk beklenir.

              Damar halkalarında

              Örneğin tavşan veya sıçan damar halkaları(3-10 mm) klasik kasılma ç alışmalarında olduğu gibi bilinen yöntemlerle çıkarıldıktan sonra fizyolojik bir tampon içine alınır. Bu tampon Krebs gibi bilinen veya HEPES içeren bir tampon olabilir.

              HEPES tamponu (mM): NaCl, 122; KCl, 4.9; MgCl2, 1.2; KH2PO4, 1.2; NaCO3, 3.6; CaCl2, 1.3; glucose, 11; HEPES, 30, (pH 7.4).

              Damar halkaları 20 dk-3 saat 1-2 μCi/ml [3H] L-arginin, 37° C'de inkübe edilir. Daha sonra ortama etkisine bakılacak maddeler konulur (eğer antago nistler konulacaksa bu maddeler ile ön inkubasyonlar yapılmalıdır) 10-60 dk beklenir.

              Eğer deney başka dokularda yapılacaksa beyin, dalak, karaciğer gibi örnekler doku parçalayıcıları ile küçük parçalara ayırılıp yukarıda adı geçen tamponlarla yıkandıktan sonra eşit parçalara ayrılarak deney gerçekleştirilebilir. Bir diğer seçenek ise dokuların standardize edilmiş ıslak ağırlıklarına göre (20-100 mg) parçacıklara ayırılır ve deneyler yukarıda tanımlandığı gibi gerçekleştirilebilir.

              Reaksiyonun sonlandırılması

              Damar ve hücrelerle yapılan deneylerde inkübasyon tamponu aspire edilir ve yaklaşık 300-500 μl buz soğukluğunda %15 trikloroasetik asit (TCA) eklenerek reaksiyon durdurulur.Örnekler 15-60 dakika buz üzerinde veya 4° C'de bekletilir. TCA hücre proteinleri ve yağları ile çözünmeyen tuzlar oluşturarak bunların çökmesine neden olur. Bu işlemden sonra hücrelerle yapılan deneylerde kuyulu plakalarda bulunan örnekler ependorf tüplerine alınmalıdır. Örnekler 1,500Xg, 10 dakika çevrilir yağ ve proteinlerin tamamen çökmesi sağlanır. Yaklaşık 300-500 μl olan süpernatan alınır.

              Öncelikle alınan örneklerden TCA uzaklaştı-rılmalı ve ortam pH sının 6-7 dolaylarında olması sağlanmalıdır. Bunun için örneklere 125 μl 100 mM EDTA ve 500 μl (1:1) Freo n(1,1,2-tricholorotrifluoroethane)/tri-n octylamine karışımından eklenmeli, örnekler karıştırılmalı ve oda sıcaklığında 15 dakika beklenmelidir. Daha sonra örnekler 12,000xg, 5-10 dakika oda sıcaklığında çevrilir. Ependorf tüplerinde 3 faz oluşur. Üst faz (yaklaşık 300-500 μl) alınır. 500-700 μl 20mM HEPES (pH 6) eklenir. Örnekler [3H]L-arginin [3H]L-sitrulin ayrıştırılmasına hazırdır.

              TCA diethylether ile uzaklaştırılabilir. Reaksiyon durdurulması ve sitozolik kısmın elde edilebilmesi için TCA yerine perklorik asit, kloroform/metanol veya metanol kullanılan protokollerde uygulanabilir

              Katyon-değiştirici kolon kromatografisi ile [3H]L-arginin [3H]L-sitrulin ayrıştırılması

              Kolon materyali (güçlü asit, sülfonik asit, Dowex 50) SO3-H+ katyonik gurubu içeren çapraz bağlı ‘styrene-divinyl benzene kafes (lattice)’ derivesi bir reçinedir. İyonik H+ ve Na+ formu vardır ve bu formlar birbirine dönüştürülebilir. Na+ formu kullanılmalıdır. H+formlu reçine 1 M NaOH ile inkube edildikten sonra reçineler pH < 8 olacak şekilde su ile yıkanmalıdır.


              nRzSO3- H+ + Mn+↔ (RzSO3)n M+nH

              Protokol​​​​​​​

              1 hacim (her bir kolon için 800-1000 μl) Na+form reçine (Dowex 50x8 200-400 mesh), 1 hacim su ile karıştırılır, kolonlara yüklenir ve reçinenin çökmesi beklenir. Örnekler kolonlara yüklenir. [3H] L-sitrullin nötral olduğu için kolonlara bağlanmayacaktır.

              1. Serbest [3H] L-sitrullin yaklaşık 4ml su ile toplanır.

              2. Kolonlara bağlanan [3H] L-arginin 2-4m l 0.1 M NaOH ile toplanır.

              Tüplere sintilasyon solüsyonu konulur ve sayılır. Tüplerden az miktarda örnekler alınıp sayım yapmakta mümkündür.

              3. Kolonlar 2-5 ml 1 M NaOH ve bunu takiben 20 ml su ile yıkanarak rejenere edilir. Kolon pH'sı kontrol edilmelidir.

              Kolonlar ıslak saklanabilir fakat uzun süreli beklemelerde bakteri ve mantar üremesi olabilir.

              Hücre ve doku homojenatlarında ölçüm​​​​​​​

              Dondurulmuş veya taze hücre ve dokular homejanizasyon tam ponu (HT) (yaklaşık 5 ml/g doku) içinde parçalanır ve homejenize (soğukta ve hızlı yapılmalıdır) edilir.

              HT (pH 7.2): 320 mM sukroz, 20 mM HEPES, 1 mM EDTA, 1 mM DTT, 10 μg/ml leupeptin, 2 μg/ml aprotinin.

              Homejanatlar 10.000Xg 30 dk (sitozol + mik-rozomal fraksiyonlar) veya 100.000xg 60 dk (sitozol) santrifuj edilir. Supernatan alınır, protein ölçümü yapılır deney için kullanılır. Endojen L-arginin yüksek olduğu düşünülüyorsa veya biliniyorsa L-arginin ortamdan uzaklaştırmak için örnekler yukarıda anlatılan kolondan geçirilir ve toplanır.

              Deney tüplerinin içine 100-200 μl deney tamponu (DT) konulur.

              DT (örnek1): 50 mM KPO4, 1.2 mM MgCl2, 0.25 mM CaCl2, 120 μM NADPH, 1.2 mM citrulline (pH 7.2)

              DT (örnek2): 50 mM HEPES, 1.25 mM CaCl2, 1 mM EDTA, 1 mM NADPH, 10 μg calmodulin (pH: 7.4)

              1- 2 μCi/ml [3H] L-arginin deney tüplerine ekle-nir. Tüpler 37° C'de 5 dk bekletilir ve örnekler 20-100 μL veya optimize edilmiş miktarda eklenerek reaksiyon başlatılır. 10-30 dk beklenildikten sonra reaksiyon iki farklı şekilde sonlandırılabilir. Birincisinde reaksiyon yukarıda hazırlanmış olan reçinenin (1-2 ml) tüplere eklenmesi ile sonlandırılır. Daha sonra ortama 5 ml su eklenir tüpler karıştırılır ve 10 dk reçinenin çökmesi beklenilir. Supernatan alınır ve sintilasyon solusyonu eklenerek sayım yapılır. Buradaki sayım [3H] L-sitrulin düzeyini gösterir. Reçinedeki [3H] L-arginin tüplere 0.1 M NAOH (2-5 ml) eklenmesi, tüplerin karıştırılması, reçinenin çökmesi ve supernatandaki radyoaktivitenin saptanması ile değerlendirilir. Diğer reaksiyon sonlandırılma tekniğinde deney tüplerine 20 mM HEPES (pH 7.2), 1 mM EDTA, NOS inhibitöru (S-ethylisothiourea veya L-NNA) içeren tamponla sonlandırılır ve örneklerdeki [3H] L-sitrullin, [3H] L arginin yukarıda anlatıldığı gibi kolonlardan geçirilerek ayrıştırılır.

              Kaynaklar

              1. Methods in Molecular Biology. Vol 100. Nitric oxide protocols. Ed.Michael A. Titherradge Hum an Press Inc. Totowa NJ.

              2. Gürdal, H, et. al. The role of nitric oxide synthase in reduced- vasocontractile responsiveness induced by prolonged αl-adrenergic receptor stimulation in rat thoracic aorta. Br. J. P harm acol (basımda).

              3. Ferro, A., Queen, L.R., Priest, R.M., Xu, B., Ritter, J.M., Poston, L., Ward, J. (1999) Activation of nitric oxide synthase by β2-adrenoceptors in human umbilical vein endothelium in vitro. Br. J. Pharmacol., 126, 1872-1880.

              ​​​​​​​4. Brown, C.A., Patel, W., Wilkinson, G. & Boarder, M.R. (1996) P2 purinoceptor-stimulated convers-ion of arginine to citrulline in bovine endothelial cells is reduced by inhibition of protein kinase C, Biochem. Pharmacol., 52, 1849-1854.


              Örnek: NOS Aktivitesi
              Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 13:01 ) değiştirilmiştir.

              Yorum yap


              • #22
                Nitrik oksit miktarlarının kemilüminesans yöntemi ile ölçülmesi

                Prof. Dr. A. Tuncay DEMİRYÜREK

                Giriş ve genel bilgiler

                Kemiluminesans yöntemi, mevcut olan en duyarlı ve doğru sonuç veren yöntemdir (Michelakis ve Archer, 1998). NO ile O3 arasındaki gaz fazı reaksiyonunun kinetiği 1954 yılında Johnston ve Crosby tarafından çalışılmıştır. İlk defa Fontijn ve ark. (1970) bu reaksiyondan yayılan ışığın şiddetini NO’nun miktarını hesaplamada kullanmışlar ve kemiluminesans yöntemini geliştirmişlerdir. Fakat, NO oksidasyon ürünlerini (NO2-, NO3-) ölçmek için bunların uçucu olmadıkları ve O3 ile reaksiyona girmediklerinden, deney öncesinde NO’ya indirgenmesi gerekmektedir. Oda sıcaklığında birçok indirgeyici ajanla NO2-, NO’ya indirgenebilir, fakat NO3-’ün NO’ya dönüşmesi için kuvvetli indirgeyici ajanlar ve yüksek sıcaklık gereklidir. 1980’de Cox ilk defa potasyum iyodür (KI) ve ferröz amonyum sülfat ve amonyum molibdatı indirgeyici ajan olarak kullanarak sulu solüsyonda NO2- ve NO3-ölçümü yapmıştır. Zafiriou ve McFarland (1980) NO-kemiluminesansı sistemini geliştirdiler. Braman ve Hendrix (1989) daha kuvvetli indirgeyici ajan olarak vanadyum (III) kullandı ve solüsyondaki NO2- ve NO3-’den NO ölçümünü gerçekleştirdi. 1987’ de Palmer ve ark. kemiluminesans yöntemini kullanarak EDRF’nin NO olduğunu gösterdiler.

                NO bir serbest radikaldir ve düşük konsantrasyonlarda ve oksijen yokluğunda stabil olmasına karşın oksijenin ve serbest oksijen radikallerinin bulunduğu biyolojik ortamda stabil değildir (Michelakis ve Archer, 1998). NO, gaz halindedir ve sudaki çözünürlüğü zayıftır. Hidrofobik özelliği ve ufak yapısı NO’nun fizyolojik fonksiyonları açısından çok önemlidir ve serbestçe hücre membranlarını geçebilmesine izin verir. Gaz fazında NO oksijenle reaksiyona girer ve NO2- ve dinitrojen trioksit (N2O3) oluşturur (Henry ve ark., 1991).

                2NO + O2→ 2NO2-
                NO + NO2- → N2O

                Oksihemoglobin ve oksimiyoglobin gibi oksihemoproteinlerin yokluğunda sıvı fazda NO’ nun otooksidasyonu %100 oranında NO2- oluşturur (Ignarro ve ark.,1993).

                4NO + O2 + 2H2O → 4HNO2→ 4NO2- + 4H

                Biyolojik sistemlerde NO, oksihemoproteinlerle NO3-’e (Ignarro ve ark., 1993) ve süperoksit anyonu varlığında peroksinitrite (ONOO-) dönüşür (Beckman ve ark., 1990). İn vivo ortamda dominant olarak NO3- oluşur ve kanda NO’nun majör metaboliti NO3-’dür (Moshage ve ark., 1995). Ayrıca kuvvetli okside edici ajanlar varlığında NO2-’den de NO3- oluşur (Michelakis ve Archer, 1998).

                NO-kemiluminesansı, NO’nun ozonla olan reaksiyonunda oluşan nitrojen dioksitin (NO2) uyarılmış durumda olmasına dayanır (Clyne ve ark., 1964, Michelakis ve Archer, 1998).

                NO + O3→ NO2* + O2 → NO2 + hv

                NO2*’nun stabil olmayan elektronları orijinal (ground state) durumuna döndüklerinde enerji yayarlar. Yayılan ışık, örnekteki NO içeriği ile lineer olarak ilişkilidir (Zafiriou ve McFarland, 1980, Archer ve ark., 1995). Işık yayılması sıcaklığa bağlıdır. NO’nun ozonla olan reaksiyonu hızlıdır (oda sıcaklığında hız sabitesi 10-7 L mol-1 s-1), bu durum NO düzeylerinin online izlenmesine olanak verir. Çok düşük aktivasyon enerjisi (10.5 KJ) olan NO + ozon reaksiyonunun aksine NO2 gibi diğer nitrojen oksitler yüksek enerjiye sahiptirler ve çok daha yavaş reaksiyona girerler (Jo hnsto n ve Crosby, 1954). Dolayısıyla, NO2 mevcut olsa da NO ile ozon arasındaki kemiluminesans reaksiyonunu etkilemez. Aynı durum CO2, C2H4, CO, NH3, SO2 veya H2O gibi diğer maddeler için de doğrudur (Fontijn ve ark., 1970). Bu reaksiyonun yüksek hız ve spesifik oluşu, NO ölçümünde yöntem olarak kullanılmasını cazip hale getirmiştir.

                Materyal

                NO-kemiluminesans analizörü


                NO-kemiluminesans analizörü, bir reaksiyo n kabini, yayılan ışığı toplayıp elektrik sinyaline dönüştüren bir ışık dedektörü ve bir kaydediciden oluşur (Şekil 1). Kemiluminesans reaksiyonunun gerçekleştiği reaksiyon kabinine analiz edilecek örnek ve ozon jeneratöründen oluşan ozon gelir. Kabindeki basınç bir vakum pompası ile sabit bir şekilde düşük (1-15 mmHg) tutulur. Reaksiyon kabinine gelen örneğin akış hızı bir iğne valf aracılığıyla kontrol edilir ve hızla yükselen NO piki verecek şekilde ayarlanır. Kabinden çıkan ozon, NO, NO2 gibi gazlar kömür filtreden geçirilerek atılır. NO2* 600 nm’nin üzerinde (660-900 nm, Zafiriou ve McFarland, 1980) zayıf kızıl ve kızılötesi ışık yayar ve sistemdeki fotomultiplier ışık dedektörü spektrumun kızıl ucunda düşük düzeydeki ışığa duyarlıdır. İnternal soğutucu, fotomultiplier tüpün sıcaklığını yaklaşık -12oC’de tutar ve bu soğutma sinyal/gürültü oranını büyük oranda düşürür. En yaygın olarak kullanılanı: Sievers® Nitric Oxide Analyzer (NOA 280i) (www.ionicsinstruments.com/ionics/). Sensitivitesi (ölçüm sınırı) gaz fazındaki NO için < 1 ppb, sıvı örneklerdeki NO için 1 pikomol olarak verilmektedir (Sievers Manual).

                Gaz

                Azot veya helyum gazı ve %100 oksijen gazı

                Kimyasallar

                NO2-/NO3- içermeyen deiyonize su

                Nitrit için: Glasiyel asetik ait, sodyum veya potasyum iyodür, sodyum veya potasyum nitrit

                Nitrat için: 1 M HCl, vanadyum III klorür, sodyum veya potasyum nitrat, 1 M NaOH


                *


                Metod

                NO-kemiluminesans reaksiyonu gaz fazında gerçekleşir. Sıvı örnek ölçülecekse, analizöre girmeden önce gaz fazına dönüştürülmelidir. Yöntemin tamamen gaz fazında gerçekleşmesi spesifikliğini artırmaktadır ve ölçülecek madde uçucu olmalı ve ozonla reaksiyonunda ışık oluşturmalıdır.

                Gaz örneklerde (solunum havasında) NO ölçümü

                Bilinen miktarda NO içeren (100-1000 ppb) NO gazı direkt olarak analizöre uygulanarak kalibrasyon yapılır. Ekspirasyon havası NO ile reaksiyona girmeyen floroetil propilen yapısındaki özel torbalara toplanır ve daha sonra torbalar NO analizörüne bağlanarak ölçüm yapılır. Ağza yerleştirilen bir tüp aracılığı ile direkt solunum havasındaki NO’nun ölçülmesi de mümkündür. Endojen NO’nun ekspirasyon havasında ölçülebileceği ilk defa 1991 yılında yapılan bir çalışma ile tavşan, kobay ve insanda gösterilmiştir (Gustafsson ve ark., 1991). NO inflamasyonda yüksek miktarlarda oluşabileceğinden, akciğer inflamasyonu veya astması olan hastalarda solunum havasındaki NO’yu ölçmek yararlı olabilir. Solunum havasındaki NO’nun pulmoner vasküler enoteliyumdan (Borland ve ark., 1993), terminal ve respiratuar bronşiyol epitelinden (Persson ve ark., 1993), nazofarinksten (Gerlach ve ark., 1994) ve paranazal sinüslerden (Lundberg ve ark., 1994, 1995) kaynaklandığı ileri sürülmüştür. Soluk havasındaki NO düzeylerinin en fazla burunda ölçülmesi, ağızda, trakeada ve distal havayolunda giderek düşen miktarların sap-anması ve nazal olarak uygulanan topikal steroid beklometazon ile nazal NO’nun azalması, insanlarda NO’nun muhtemelen iNOS aracılıklı olarak burunda ve paranazal sinüslerde sentez edildiğini düşündürmektedir (Dillon ve ark., 1996).

                NO-kemiluminesans yöntemi hızlı ve duyarlıdır (ölçüm eşiği 1 ppb) ve tekrarlanabilir sonuçlar vermektedir. Sağlıklı kişilerde solunum havasındaki NO nazal kaviteden orijin almasına karşın, ciddi akciğer inflamasyonunda bu durum değişmektedir. Örneğin, astmada aşağı havayolundan kaynaklanan NO miktarı anlamlı olarak artmaktadır (Alving ve ark., 1993). Dolayısıyla, bu yöntem astmanın alevlenmesinin klinik olarak belirlenmesinde yardımcı olabilir. Yetişkinlerde ve çocuklarda ekshale edilen aşağı respiratuar NO ve nazal NO’nun ölçümü ile ilgili standart prosedürler yayınlanmakta (Recommendations, 1999) ve güncelleştirilmektedir (ATS/ERS Recommendations, 2005).

                Sıvı örneklerde NO ölçümü

                NO2- ölçümü:
                Taze hazırlanmış ve ışıktan korunmuş nitrit (NaNO2) standartları ile dilüsyonlar hazırlanır. Azot veya helyum gazı ile havalandırılan 3 ml 1 M KI ve 3 ml 1 M HCl içerisine belirli bir hacimde standart enjeksiyonları ile kalibrasyon eğrisi çıkarılır. Sodyum iyodür (NaI) ve krom (III) de NO2-’yi NO’ya dönüştürür (Yang ve ark., 1997). Örnekler gaz geçirmeyen enjektörlerde toplanır. Perfüze organ deneyleri gibi in vitro deneylerde NO saptanmasını artırmak için örneklerde O2 ve oksidanların miktarı azaltılması gibi çeşitli stratejiler kullanılabilir. Küçük miktardaki NO’ yu stabilize etmek için, bu stratejiler arasında hipoksi uygulaması ve süperoksit dismutaz (SOD) eklenmesini sayılabilir (Archer ve Cowan, 1991). Fakat, hipoksinin NOS aktivitesini modüle ederek indirekt olarak (McQuillan ve ark., 1994, Tai ve ark., 2004), veya NO’nun partitisyonunu etkileyerek direkt olarak (Archer ve ark., 1995) NO düzeylerini etkileyebileceğini bilmek gerekir. SOD, arter halkalarında oluşan NO’yu saptamada kullanılmıştır (Archer ve Cowan, 1991), fakat bu uygulamada NO’nun NO2-’ye oksidasyonunu önlemez. Örnekler, KI ve HCl karışıma enjekte edilir ve oluşan pikler kaydedilir. Örnekler eğer protein içeriyorsa, köpük önleyici ajan katılabilir. Örneklerdeki NO2- miktarı standart eğri kullanılarak belirlenir. Örnek enjeksiyonu 2-3 kez yapılarak tekrarlanır. Her biri 100 l olan örnekten yaklaşık 5 enjeksiyondan sonra KI, HCl ve köpük önleyici ajan yenisiyle değiştirilir.

                Asit varlığında, NO2- nitrosonyum iyonuna (NO+) dönüşür

                NO2- + 2H+→ NO+ + H2O

                NO+ hızla iyod (NaI veya KI) veya vanadyum (III) gibi nükleofillerle reaksiyona girer ve NO oluşur.

                NO+ + I-→ ONI

                2ONI → 2NO + I 2 veya özetle:

                NO2- + 2H+ + e-→ NO + H2O


                NO3- ölçümü:Taze hazırlanmış ve ışıktan korunmuş nitrat (NaNO3) standartları ile dilüsyonlar hazırlanır ve nitrit ölçümündeki gibi kalibrasyon eğrisi çıkarılır. Burada vanadyum ve asit ortam 90-95oC’ye ısıtılır. Oda sıcaklığında, vanadyum (III) NO2-’yi indirgerken, NO3-’ü indirgemez. Sıcaklık 90-95oC’ye çıkarılması ile NO3-’de NO’ya dönüşür. Örnekteki NO3-’ün NO2-’ye dönüştürmede kullanılan diğer protokoller arasında bakırplakalı kadmiyum dolgulu kolonlar (Green ve ark., 1991), hidrazin (Kempers ve Luft, 1988), bakteriyel (Granger ve ark., 1990, Archer ve ark., 1995) ve pürifiye edilen (Aspergillus spp.) nitrat redüktazlar (Moshage ve ark., 1995) bulunur. Ticari olarak bulunan nitrat redüktazlar oldukça pahalıdır. Escherichia coli veya Pseudomonas oleovorans nitratınitrite metabolize eder sonrasında bakteri santrifüj ile uzaklaştırılır (Hibbs ve ark., 1992). Örnekler protein içeriyorsa, köpük önleyici ajan kullanılabilir. Örneklerdeki NO3- miktarı standart eğri kullanılarak belirlenir. Oluşan pik, örnekteki total NO2- + NO3- içeriğini yansıtır. Örnek enjeksiyonu 2-3 kez yapılarak tekrarlanır. Her biri 100 μl olan örnekten yaklaşık 5 enjeksiyondan sonra vanadyum, HCl ve köpük önleyici ajan yenisiyle değiştirilir. Bu yöntem NO2- ölçümü için oda sıcaklığında yapılabilir. Bu değerler, 90-95oC’de ölçülen değerlerden çıkarılarak NO3- içeriği belirlenebilir. Asidik ortamda kuvvetli indirgeyici ajanlar, vücut sıvılarındaki nitrosotiyolleri ve nitrosoaminleri de NO’ya indirger (Walters ve ark., 1987).


                2 NO3- + 3V+3 + 2H2O → 2NO + 3VO2+ + 4H

                Doku homejanatlarından da NO ölçümü yapılabilmektedir. Doku makasla ince parçalar hali ne getirilir ve soğutulmuş 5 hacim fosfat tamponlu salin (pH 7.4) eklenerek buz içinde bir homojenizatör kullanılarak homojenize edilir. Sonra 10 dak 14 000 rpm’de santrifüj edilir ve pelletler atılır. Süpernatant, 1:2 v/v oranında soğut ulm uş (0oC) absolu etanol ile deproteinize edilir ve örnekler 30 dak 0oC’de inkübe edildikten sonra 14 000 rpm’de 5 dak santrifüj edilir. Süpernatant NO ölçümü için kullanılır (Tejero-Taldo ve ark., 2002). Doku örnekleri nmol/mg protein olarak hesaplanır. Ölçümlerimizde ve analizde NOAnalysisTM(version 3.21, Sievers, Boulder, CO, A.B.D.) programı kullanılmaktadır.

                NO-kemiluminesansı, tamamıyla olmasa da yüksek oranda NO için spesifiktir. Sülfidler aminler, H2S gibi kemiluminesans sinyali verebilen diğer birkaç madde ya uçucu değildir, NO’dan belirgin olarak daha düşük partitisyon katsayısı küçüktür veya biyolojik sistemlerde oluşmaz. Kemiluminesans oluşturabilen bir çok radikal dedektöre girmeden önce yıkılır. Dedektör NO2 için duyarlı değildir. Solvan olarak yaygın bir şekilde kullanılan dimetil sülfoksit yüksek dozlarda kemiluminesans sinyali verebilmektedir (Archer, 1993). Düşük dozlar (10 ml için 0.1 ml’den az) kullanılarak veya fotomultiplier önüne kızıl cut-off filtre yerleştirilerek bu sinyal önlenebilir. NaOH, hidrojen sülfürü uzaklaştırmak için kullanılabilir (Michelakis ve Archer, 1998). Greenberg ve ark. (1995) nitro içeren L-arjinin analogları NG-nitro-L-arjinin metil esteri (L-NAME) ve NG-nitro-L-arjininin (L-NA) kemiluminesans yöntemiyle etkişim gösterdiğini bildirdiler. L-NAME, L-NA ve aminoguanidinin sıçanlara in vivo uygulaması plazma NO düzeylerini anlamlı olarak artırırken, N5-iminoetil-L-ornitin (L-NIO), 3-amino-1,2,4-triazin (3-AT) ve L-NG-monometilarjinin (L-NMMA) ile artma olmamaktadır. İn vitro HEPES tampon solüsyonuna L-NAME, D-NAME ve L-NA ilavesi kemiluminesans sinyali oluşturmaktadır (Greenberg ve ark. 1995).

                NO-kemiluminesans analizörü kullanılarak S-nitrosotiyollerin (Fang ve ark., 1998, Ewing ve Janero, 1998), S-nitrosohemoglobin (Gladwin ve ark., 2000) ve hemoglogine bağlıNO’nun (Rogers ve ark., 2005) ölçülebileceği bildirilmiştir.

                Kaynaklar

                Alving K, Weitzberg E, Lundberg JM. Increased amount of nitric oxide in exhaled air of asthmatics. Eur Respir J. 1993;6(9):1368-70.

                Archer S. Measurement of nitric oxide in biological models. FASEB J. 1993;7(2):349-60.

                Archer SL, Cowan NJ. Measurement of endothelial cytosolic calcium concentration and nitric oxide production reveals discrete mechanisms of endothelium-dependent pulmonary vasodilatation. Circ Res. 1991;68(6):1569-81.

                Archer SL, Shultz PJ, Warren JB, Hampl V, DeMaster EG. Preparation of standards and measurement of nitric oxide, nitroxyl, and related oxidation products. Methods 1995;7:21-34.

                ATS/ERS Recommendations for Standardized Procedures for the Online and Offline Measurement of Exhaled Lower Respiratory Nitric Oxide and Nasal Nitric Oxide, 2005. Am J Respir Crit Care Med. 2005;171(8):912-930.

                Beckman JS, Beckman TW, Chen J, Marshall PA, Freeman BA. Apparent hydroxyl radical production by peroxynitrite: implications for endothelial injury from nitric oxide and superoxide. Proc Natl Acad Sci U S A 1990;87(4):1620-4.

                Borland C, Cox Y, Higenbottam T. Measurement of exhaled nitric oxide in man. Thorax 1993;48(11):1160-2.

                Braman RS, Hendrix SA. Nanogram nitrite and nitrate determination in environmental and biological materials by vanadium (III) reduction with chemiluminescence detection. Anal Chem. 1989;61(24):2715-8.

                Clyne MAA, Thrush BA, Wayne RP. Kinetics of the chemiluminescent reaction between nitric oxide and ozone. Trans. Faraday Society, 1964; 60:359-370.

                Cox RD. Determination of nitrate and nitrite at the parts per billion level by chemiluminescence. Anal. Chem. 1980;52:332-5.

                Dillon WC, Hampl V, Shultz PJ, Rubins JB, Archer SL. Origins of breath nitric oxide in humans. Chest 1996;110(4):930-8.

                Ewing JF, Janero DR. Specific S-nitrosothiol (thionitrite) quantification as solution nitrite after vanadium(III) reduction and ozone-chemiluminescent detection. Free Radic Biol Med. 1998;25(4-5):621-8.

                Fang K, Ragsdale NV, Carey RM, MacDonald T, Gaston B. Reductive assays for S-nitrosothiols: implications for measurements in biological systems. Biochem Biophys Res Commun. 1998;252(3):535-40.

                Fontijn A, Sabadell AJ, Ronco RJ. Homogeneous chemiluminescent measurement of nitric oxide with ozone. Implications for continuous selective monitoring of gaseous air pollutants. Anal. Chem. 1970;42:575-9.

                Gerlach H, Rossaint R, Pappert D, Knorr M, Falke KJ. Autoinhalatio n of nitric oxide after endogenous synthesis in nasopharynx. L ancet 1994;343(8896):518-9.

                Gladwin MT, Shelhamer JH, Schechter AN, Pease-Fye ME, W aclawiw MA, Panza JA, Ognibene FP, Canno n RO 3rd. Role of circulating nitrite and S-nitrosohemoglobin in the regulation of regional blood flow in humans. Proc Natl Acad Sci U S A 2000;97(21):11482-7.

                Granger DL, Hibbs JB Jr, Perfect JR, Durack DT. Metabolic fate of L-arginine in relation to microbiostatic capability of murine macrophages. J Clin Invest. 1990;85(1):264-73.

                Green LC, Ruiz de Luzuriaga K, Wagner DA, Rand W, Istfan N, Young VR, Tannenbaum SR. Nitrate biosynthesis in man. Proc Natl Acad Sci U S A 1981;78(12):7764-8.

                Greenberg SS, Xie J, Spitzer JJ, Wang JF, Lancaster J, Grisham MB, Powers DR, Giles TD. Nitro containing L-arginine analogs interfere with assays for nitrate and nitrite. Life Sci. 1995;57(21):1949-61.

                Gustafsson LE, Leone AM, Persson MG, W iklund NP, Moncada S. Endogenous nitric oxide is present in the exhaled air of rabbits, guinea pigs and hum ans. Biochem Biophys Res Commun. 1991;181(2):852-7.

                Henry Y, Ducrocq C, Drapier JC, Servent D, Pellat C, Guissani A. Nitric oxide, a biological effector. Electron paramagnetic resonance detection of nitrosyl-iron-protein complexes in whole cells. Eur Biophys J. 1991;20(1):1-15

                Hibbs JB Jr, Westenfelder C, Taintor R, Vavrin Z, Kablitz C, Baranowski RL, Ward JH, Menlove RL, McMurry MP, K ushner JP, Samlowski WE. Evidence for cytokine-inducible nitric oxide synthesis from L-arginine in patients receiving interleukin-2 therapy. J Clin Invest. 1992;89(3): 867-77.

                Ignarro LJ, Fukuto JM, Griscavage JM, Rogers NE, Byrns RE. Oxidation of nitric oxide in aqueous solution to nitrite but not nitrate: comparison with enzymatically formed nitric oxide from L-arginine. Proc Natl Acad Sci U S A 1993;90(17):8103-7.

                Johnston HS, Crosby HJ. Kinetics of the fast gas phase reaction between ozone and nitric oxide. J. Chem. Phys. 1954;22:689-92.

                Kempers AJ, Luft AG. Re-examination of the determination of environmental nitrate as nitrite by reduction with hydrazine. Analyst. 1988;113(7):1117-20.

                Lundberg JO, Farkas-Szallasi T, Weitzberg E, Rinder J, Lidholm J, Anggaard A, Hokfelt T, Lundberg JM, Alving K. High nitric oxide production in hum an paranas al sinuses. Nat Med. 1995;1(4):370-3.

                Lundberg JO, Rinder J, Weitzberg E, Lundberg JM, Alving K. Nasally exhaled nitric oxide in humans originates mainly in the paranasal sinuses. Acta Physiol Scand. 1994;152(4):431-2.

                McQuillan LP, Leung GK, Marsden PA, Kostyk SK, Kourembanas S. Hypoxia inhibits expression of eNOS via transcriptional and posttranscriptional mechanisms. Am J Physiol. 1994;267(5 Pt 2):H1921-7.

                Michelakis ED, Archer SL. The measurement of NO in biological systems using chemiluminescence. In: Methods in Molecular Biology, Nitric Oxide Protocols, Ed. M.A. Titheradge, Humana Press Inc., Totowa, New Jersey, 1998, pp.111-127.

                Moshage H, Kok B, Huizeng a JR, Jansen PL. Nitrite and nitrate determinations in plasma: a critical evaluation. Clin Chem. 1995;41(6 Pt 1):892-6.

                Palmer RM, Ferrige AG, Moncada S. Nitric oxide release accounts for the biological activity of endothelium-derived relaxing factor. Nature 1987;327(6122):524-6.

                Persson MG, W iklund NP, Gustafsson LE. Endogenous nitric oxide in single exhalations and the change during exercise. Am Rev Respir Dis. 1993;148(5):1210-4.

                Recommendations for standardized procedures for the on-line and off-line measurement of exhaled lower respiratory nitric oxide and nasal nitric oxide in adults and children-1999. This official statement of the American Thoracic Society was adopted by the ATS Board of Directors, July 1999. Am J Respir Crit Care Med. 1999;160(6):2104-17.

                Rogers SC, Khalatbari A, Gapper PW, Frenneaux MP, James PE. Detection of human haemoglobin-bound nitric oxide. J Biol Chem. 2005 (in press).

                Tai SC, Robb GB, Marsden PA.Endothelial nitric oxide synthase: a new paradigm for gene regulation in the injured blood vessel. Arterioscler Thromb Vasc Biol. 2004;24(3):405-12.

                Tejero-Taldo MI, Gursoy E, Zhao TC, Kukreja RC. -adrenergic receptor stimulation produces late preconditioning through inducible nitric oxide synthase in mouse heart. J. Mol. Cell. Cardiol. 2002;34:185-95.

                Walters CL, Gillatt PN, Palmer RC, Smith PL. A rapid method for the determination of nitrate and nitrite by chemiluminescence. Food Addit Contam. 1987;4(2):133-40.

                Yang F, Troncy E, Francoeur M, Vinet B, Vinay P, Czaika G, Blaise G. Effects of reducing reagents and temperature on conversion of nitrite and nitrate to nitric oxide and detection of NO by chemiluminescence. Clin Chem. 1997;43(4): 657-62.

                Zafiriou OC, McFarland M. Determinatio n of trace levels of nitric oxide in aqueous solution Anal. Chem. 1980;52:1662-7.
                Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 12:59 ) değiştirilmiştir.

                Yorum yap


                • #23
                  Nitrik oksit miktarlarının amperometrik (elektrokimyasal) yöntem ile ölçülmesi

                  Doç Dr. Kansu BÜYÜKAFŞAR

                  NO tayini ile ilgili bir çok yöntem olmasına karşın bu yöntemlerin bir kısmı gelişmiş ve pahalı cihazlara (EPR spektroskopisi ve kemilüminesans) ihtiyaç gösterirken bir kısmı ise gerekli hassasiyetin dışında (UV/VIS spektroskopisi) olabilmektedir. Ancak son birkaç yıldır oldukça hassas ölçüm limiti (nM düzeylerinde) olan elektrokimyasal metodlar geliştirilmiştir. Bugün dünyada ticari olarak mevcut ve kolay elde edilebilir olmasından dolayı en çok kullanılan elektrokimyasal sensörlerden biri, Clark tipi elektrodlardır. Bu sensorün ölçüm esası, NO’nun gaz geçirgen bir membrandan ve ince bir elektrolit tabakasından diffüzyonu ve bunu takiben ölçüm elektrodlarını okside etmesine dayalıdır.


                  Bu oksidasyon, membranın dışındaki NO’nun konsantrasyonu ile orantısal bir akım yaratır. Üretici firmaya göre, bu elektrodlar (sensorlar, problar) O2, N2, NO2 ve CO’e duyarsız iken CO2’ye duyarlı olabilmektedir. CO2 esasında prob ile elektrokimyasal etkileşmeye girmez, fakat sensor içindeki elektrolitin pH’sını düşürür ve böylece etkileşme gösterir. Kimi kaynaklara göre elektrodların tayin limitleri yaklaşık 20 nM’den 10 mM’ya kadar uzanır. Bu değerler kemilüminesans ve EPR’dan yaklaşık 10 kez daha daha yüksek hassasiyete işaret etmektedir. Elektrokimyasal yönteme dayalı Clark probları porfirinik esaslı NO sensorlarından daha az duyarlıdır ancak bu son problar ticari olarak mevcut değildir. Diğer bir NO tayin yöntemi ise oksihemoglobinin NO tarafından methemoglobine dönüşümünü içeren yöntemdir ve 401 veya 577 nm’de fotometrik olarak yapılır. Bu yöntemin duyarlılığı Clark ile mukayese edilebilir düzeydedir, fakat gerekli selektiviteden yoksun olabilmektedir. Çünkü HbO2’nin Met-Hb’e dönüşümü aynı zamanda süperoksid anyonları ile de gerçekleşir ve NO’nun yaptığı spektral değişim, aynı zamanda ONOO- tarafından da oluşturulur. Bu tür etkileşmeler elektrokimyasal NO tayini ile görülmez (Schmidt ve diğ. 1998; World Presicion Instruments (WPI) NO-metre kullanım kitapçığı ve kataloğu).

                  Diğer taraftan Clark elektrodları ile NO tayininde bir çok avantaj bulunmasına karşın bu probların kullanımı onların oldukça uzun reaksiyon zamanı (yaklaşık 2-3 sn) ile kısıtlanır. Ancak porfirinik esaslı NO problarında bu latent süre 10 ms civarındadır. NO’nun oksihemoglobin ile olan reaksiyonu da oldukça hızlıdır. Bu durum NO’nun akım sistemlerinde geçici değişikliklerin ölçüldüğü veya NO’nun diğer moleküllerle oluşturduğu hızlı reaksiyona girdiği deney sistemlerinde özellikle önemlidir. Bu kısıtlamalara rağmen Clark tip NO probları bir çok deneysel durumda kullanılan önemli araçlardır. NO-metre veri kaydedici bir sisteme (Duo-18 veya basit bir program ya da Biopac veya Powerlab-MacLab) ve oradan da bir bilgisayara bağlanır. NO’nun ölçüleceği kabın dibine manyetik karıştırıcı konur ve sürekli karıştırılır. NO tayini yapılırken karıştırma yapmanın karıştırma yapmamaya göre anlamlı olarak daha fazla NO sinyali ürettiği tespit edilmiştir. Gerekirse NO’nun ölçüleceği kabın ağzı kauçuk bir tıpa ile kapatılır fakat uygulama yapmaya uygun iğneler yerleştirilir, ya da WPI firmasının geliştirdiği gaz geçirmez haznelerde deneyler yapılır. Prob NO’nun ölçüleceği sıvıya daldırılır ve akımın stabil olmasına dek beklenir. Stabil olduktan sonra cihaz üzerindeki bir düğme ile akım değeri sıfırlanır ve deneye başlanır. Akım sistemlerinde de NO ölçümü yapılabilir. Bunun için, T-adaptör kitlerine ihtiyaç vardır. Eğer bazal akım sabitse, akımın hızı 14 ml/dk’ya çıkmasına rağmen NO-metre üzerindeki sinyal değişmez.

                  Probların bakımı

                  Kullanılan problar 5 dk boyunca distile su içinde tutularak temizlenir. Protein içeren solüsyonlarda kullanılan problar, proteaz içeren solüsyonlarda birkaç dk tutularak yapışmış proteinler temizlenebilir ve sonra distile su içinde 15-20 dk bekletilir. Bu arada manyetik karıştırıcı sürekli ortamı karıştırırsa, daha iyi temizleme sağlanmış olur. Sensor deneylerde kullanılmayan zamanlarda da yine distile su içinde bekletilmelidir. Kullanılmayan yeni problar serin, kuru ve güneş ışığı almayan ortamlarda saklanmalıdır.

                  Kalibrasyon

                  Kalibrasyon için, nitrit standart solüsyonu kullanılır (0.1 veya 1 mM KNO2). Her gün taze hazırlanır. H2SO4+KI karışımı ile değişik konsantrasyonlarda standartlarla konsantrasyon/piko-amper değerleri alınır.

                  2KNO2 + 2KI + 2H2SO4→ 2NO + I2 + 2H2O + 2K2SO

                  1. Kalibrasyon solüsyonu (0.1 M H2SO4içinde 0.1 M KI solüsyonu (25 oC) 1 dk boyunca helyum ya da argon ile gazlandırılır ve ölçüm kabına 1.8 ml olacak şekilde ilave edilir.

                  2. Kabın ağzı kauçuk tıpa ile kapatılır ve NO probu kabın içine daldırılır.

                  3. NO-metredeki akım göstergesi stabil oluncaya kadar beklenir.

                  4. 7.2 ml 0.1mM KNO2 solüsyonu viyale injekte edilir. 0.4 μM’luk bir NO konsantrasyonu elde edilir.

                  5. Kalibrasyon eğrisi çizilir ve kalibrasyon faktörü (= duyarlılık) hesaplanır.

                  Başka bir kalibrasyon yöntemi ise NO-metre-nin “slope” fonksiyonu ile yapılır. Buradaki prosedür ise aşağıdaki gibidir.

                  1. Kalibrasyon solüsyonu (0.1 M H2SO4 için-de 0.1 M KI solüsyonu (25 oC) 1 dk boyunca helyum ya da argo n ile gazlandırılır ve ölçüm kabına 1.8 ml olacak şekilde ilave edilir.

                  2. Kabın ağzı kauçuk tıpa ile kapatılır ve NO probu kabın içine daldırılır.

                  3. NO-metredeki akım göstergesi stabil oluncaya kadar beklenir.

                  4. 3.6ml 1 mM KNO2 solüsyonu viyale injekte edilir. Bu 2 mM’lük bir NO konsantrasyonu oluşturacaktır. Gösterge-deki NO sinyali stabil olur olmaz cihaz üzerindeki slope 2 mM’e ayarlanır.

                  5. Kalibrasyonu doğrulamak için 3.6 ml’lik bir injeksiyon daha yapılır. Bu durumda göstergede 3.8-4.2 mM’lük bir değer olmalı. Teorik ve hesaplanan NO konsantrasyonları 5%’den daha fazla farklı ise kalibrasyon tekrar edilir.

                  Kalibrasyon için SNAP ile CuSO4 arasındaki reaksiyona dayalı bir yöntem daha vardır. Özellikle hassas probların kalibrasyonu bu şekilde yapılır (Nelli ve diğ., 2000).

                  Uyarılar

                  1. NO probları kullandıkça ömürleri azalmaktadır. Belirli bir süre kullanıldıktan sonra değiştirilmelidir.

                  2. NO metrenin düzeneğinin bağlandığı prizler topraklı olması, maksimum duyarlılık için gereklidir.

                  3. Ölçüm yaparken homojen dağılım yapabilmek için karıştırma esastır. Manyetik karıştırıcı mutlaka deney boyunca dönmelidir.

                  4. Elektrodları temizlerken ya da takarken maksimum dikkatle çalışılmalıdır zira membranlar hasar görebilir. Hasarlı problar 1 mM NaCl solüsyonuna daldırılırsa sürekli ve değişen genliği çok fazla olan bir akım verir.

                  5. Problar günden güne değişen sinyaller verebilir. Bundan dolayı her gün kalibrasyon gerekebilir.

                  6. Yalancı pozitif sinyallere karşı uyanık olunmalı, mutlaka kontrollü çalışılmalıdır (Schmidt ve diğ. 1998; WPI NO-metre kataloğu ve kullanım klavuzu)

                  Amperometrik esasa göre NO düzeylerinin ölçüldüğü çalışmalarımız

                  Yaptığımız tüm çalışmalar hücresiz (cell-free) ortamlarda gerçekleştirildi. Nitroksil anyonunun (NO-) bazı ajanlar tarafından nitrik oksid radikaline dönüşümü incelendi. Ayrıca UV ışığı ile fotosensitif olduğunu düşünülen bir takım bileşiklerden (NaNO2, SNP, 3-nitrotirozin, NG-nitro-L-arginin) olası NO oluşumunu araştırıldı. Nitroksil vericisi olarak Angeli tuzu kullanıldı (Na2N2O3). Bu madde pH 9’un üstünde HNO olarak bulunur. Bu asidin iyonizasyonu sonucu NO- anyonu açığa çıkmaktadır.

                  Na2N2O3→ HNO →NO- + H+


                  Cu2+ + NO- → Cu+ + •NO (1)

                  Cu+ + NO- → Cu0 + •NO (2)


                  Kaynaklar

                  1. Büyükafşar K, Nelli S, Martin W. K. Büyükafşar,S. Nelli, W. Martin. Formation of nitric oxide from nitroxyl anion: Role for quinone and ferricytochrome c. Br. J. Pharmacol., 132: 165-172, 2001.

                  2. Büyükafşar K, Levent A, Ün İ, Ark M, Arıkan O , Özveren E. Mediation of nitric oxide from photosensitive stores in the photorelaxation of the rabbit corpus cavernosum. Eur. J. Pharmacol., 459: 263-267, 2003.

                  3. Nelli S, Hilen M, Büyükafşar K, Martin W. Oxidation of nitroxyl anion to nitric oxide by copper ions. Br. J. Pharmacol., 131: 356-362, 2000.

                  4. Schmidt K and Bernd Mayer. Determinatio n of NO with a Clarck-type electrode. Methods in Molecular Biology. Nitric oxide protocols Ed. By Titheradge MA, vol. 100, s. 101-109. Humana Pres Inc. Towoto, NJ, ABD, 1998.

                  5. World Precision Instruments. Laboratory Equipment for the life sciences kataloğu, International Edition, s. 43-50, 2005.
                  Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 12:56 ) değiştirilmiştir.

                  Yorum yap


                  • #24
                    Nitrik oksit miktarlarının Griess yöntemi ile ölçülmesi

                    Doç Dr. Bahar TUNÇTAN

                    Nitrik oksit (NO) biyolojik sistemlerde NO sentaz NOS adı verilen bir enzim tarafından oluş-maktadır. Bazik bir amino asit olan L-arjinin-den NO oluşumuna neden olan NOS enziminin nöronal NOS (nNOS, NOS I), endoteliyal NOS (eNOS, NOS III) ve iNOS (NOS II) olmak üzere üç farklı izoformu bulunur. nNOS ve eNOS yapısal enzimlerdir; iNOS ise çeşitli uyarılar ile indüklenebilmektedir. yNOS olarak da bilinen eNOS ve nNOS kalsiyum ve kal-moduline bağımlı, iNOS ise kalsiyum ve kal-modulinden bağımsız izoformlardır. NOS moleküler oksijen, L-arjinin ve nikotinamit dinükleotit fosfat (NADPH) kullanarak NO, sitrülin ve NADP+ oluşumuna neden olur. Bu olaylar sırasında NOS flavin mononükleotit (FMN), flavin adenin dinükleotit (FAD), hem, kalmodulin ve tetrahidrobiyopterin gibi kofaktörler ile kalsiyum ve hem demiri gibi iki değerli katyonlara gerek duyar(1,11,22).

                    NOS enzimleri aracılığı ile oluşan NO biyolojik dokularda bir dizi reaksiyona girer. Bunlardan nitrit ve nitrat oluşumu ile ilgili olan reaksiyonlar;

                    2NO + O2→ 2NO2
                    2NO2↔ N2O4
                    N2O4 + 2OH- → NO2- + NO3- + H2O
                    NO2 + NO → N2O
                    N2O3 + 2OH-→ 2NO2- + H2O

                    Yapısal NOS enzimleri submikromolar miktarlarda NO oluşumuna neden olur. Örneğin, damar endotel hücrelerinde bulunan eNOS tarafından oluşturulan NO 2-20 nmol/l kadardır; bu miktarın sirkülasyona yansıyan kısmı ise 1-10 nmol/l kadardır. Tersine, iNOS ile oluşan NO miktarı hücreden hücreye değişmek koşulu ile 10 μM'a kadar ulaşabilir. In vitro olarak, iNOS eksprese eden hücrelerde 24 saat veya daha fazla bir süre içerisinde 5 μM'den fazla NO oluştuğu bildirilmiştir(11,12).

                    NO yarılanma ömrü çok kısa olan bir bileşiktir. Kan gibi fizyolojik ortamlarda yarılanma ömrü 6-20 saniye kadardır ve bu durum bazal koşullarda NO ölçümünü güçleştirmektedir(4,13,14). NO, her ne kadar elektrokimyasal ve kemilüminesans gibi yöntemler ile direkt olarak ölçülebilse de, hızlı ve basit bir yöntem olarak çoğu örnekte NO metabolizmasının dayanıklı son ürünleri olan nitrit (NO2-) ve nitrat (NO3-) miktarlarının ölçülmesi de sıklıkla kullanılmaktadır. Griess yöntemi ile duyarlılık limitinin 0.1-1 μM kadar olduğu bildirilmiştir(14).

                    NO metabolizmasının incelenmesi için sadece nitrit miktarlarının ölçümü sıklıkla kullanılsa da, bu reaksiyonlar sonucunda nitratın da oluştuğu ve biyolojik sistemlerde nitritin hem demiri içeren proteinler varlığında nitrata okside olduğu da unutulmamalıdır(8). Fizyolojik koşullarda NO yaklaşık 3:2 oranında nitrit ve nitrata okside olmaktadır. Oksijenlenen çözeltilerde nitritin nitrata dönüşümü oldukça yavaştır. Bütün bunlar ile birlikte, nitrit ve nitratın oluşum oranları değişken ve örneğe de bağlı olduğundan, NO metabolizmasının derecesinin en iyi göstergesi nitrit ve nitratın ikisinin birden (NOx olarak ifade edilir) ölçülmesi ile elde edilen sonuçlardır. Nitrit vücut sıvılarında nitrattan daha az konsantrasyonda bulunduğundan, çoğu durumda NOx nitrat konsantrasyonlarını ifade eder. Bazı çalışmalarda "nitrit ve nitrat" ölçüldüğü halde, sıklıkla yanlış olarak sonuçlar "nitrit" olarak ifade edilmektedir; araştırıcılar bu durumun karışıklığa neden olduğunu belirtmekte ve terminolojiye dikkat edilmesi gerektiğini vurgulamaktadırlar(4,5,20).

                    Nitrit ölçümü için 50'den fazla kolorimetrik yöntem kullanılmıştır; bu yöntemlerden çoğu azo boyalarının oluşumu temeline dayanmaktadır(16). Günümüzde, örneklerdeki nitrit ve nitrat miktarları iki aşamalı bir yöntem ile ölçülmektedir. Öncelikle nitrat enzimatik dönüşüm(17,30,32) veya metalik kadmiyum 3,6 ile nitrite indirgenir. Oluşan toplam nitrit ise hemen hemen her örnekte kullanılabilecek bir yöntem olan Griess yöntemi ile ölçülür.

                    Griess yöntemi nitritin asidik ortamda primer bir aromatik amin ile (sülfanilamit) diazotizasyonu ve N-(1-naftil) etilendiamin hidroklorit (NED) ile mor renkli bir azo ürünü oluşturması esasına dayanır (Griess reaksiyonu) (Şekil 1). Griess reaksiyonu, nitrit iyonlarına duyarlı olduğundan, ortamdaki nitratın nitrite indirgenmesi in vivo olarak oluşan NO’nun gerçeğe yakın miktarlarda ölçümüne olanak tanımaktadır(4,5,18-20). Diğer yandan, Griess yönteminin submikromolar düzeyde NO ölçümü için uygun olmadığı, ancak, nitrit ve birlikte bulunan nitroksitlerin ölçümü için en uygun ölçüm yöntemi olduğu da düşünülmektedir(2).


                    Griess yöntemi ile nitrit/nitrat düzeylerinin basit, duyarlı ve spesifik bir şekilde ölçülebilmesi yanında bazı noktalara dikkat edilmesi gerekmektedir. Bu yöntemin bir dezavantajı, ortamda KCl, Ca(NO3)2, NH4Cl, MgSO4 ve CuSO4 gibi maddelerin 10-4 M’dan daha düşük konsantrasyonlarda bulunması durumunda ± %0.2 kadar hatalı sonuçlar verebilmesidir(10). Ayrıca, sistein, glutatyon, askorbik asit, NADH ve NADPH gibi indirgeyici maddeler(3) ve L-arjinin analogları(7,15) ile de etkileşme olduğu bildirilmiştir.

                    Örneklerin hazırlanması

                    Örnekler buzlu ortamda toplanmalıdır ve -20°C'de saklanmalıdır; mümkün olduğunca çabuk analiz edilmelidir. Bakteri kontaminasyonu veya benzeri bir sorun olmuşsa, nitratın nitrite olası metabolizmasını önlemek için örnekler filtrasyon yöntemi ile sterilize edilmelidir. Asidik pH nitriti parçaladığından, asit özellikteki koruyuculardan kaçınılmalıdır. Plazma ve idrar örneklerinde nitrit konsantrasyonları, genellikle nitratın küçük bir fraksiyonudur (%5'ten az); bu durum nitrit ve nitratın diyet ile alınan ve bu iyonların biyoreaktivitesini yansıtır(5).

                    Bazı araştırıcılar serum, plazma veya idrar örneklerinin ölçümden önce deproteinize edilmelerini önermektedir(18). Proteinlerin çöktürülmesi genellikle gerekmez; ancak, proteinlerin çöktürülmesi gerekiyorsa nitratredüktaz enzimleri ile etkileşmeyen bir çöktürme yöntemi seçilmelidir(20). Deproteinizasyon için kullanılan yöntemler ultrafiltrasyon, çinko sülfat, kadmiyum ve çeşitli asitler gibi maddeler ile örneğin muamelesidir(9,6,31). Ancak, sonuçların plazma proteinlerinden anlamlı bir şekilde etkilenmediği de gösterilmiştir(21). Diğer yandan, başlangıçta asit ve NED'den sonra sülfanilamit ilavesinin (NED'nin sülfanilik asit için yarışması azalacaktır) ve reaksiyon yürüdüğü sırada 4°C'de çalışılmasının yöntemin duyarlılığını artırdığı da bildirilmiştir(18).

                    İdrar

                    İdrar örneklerindeki nitrit ve nitrat miktarı 200-2000 μM arasında değişir. Bundan dolayı örneklerin yaklaşık 10 kat dilüe edilmesi gerekir. Dilüsyon için format nitrat redüktaz yönteminde distile su, NADP'ye bağımlı nitratredüktaz yönteminde ise sodyum fosfat tamponu kullanılmalıdır. Her iki yöntemde de %0.5-10 (h/h) arasındaki dilüsyonlar nitratın nitrite dönüşümünü etkilemez; ancak, NADP' ye bağımlı nitrat redüktaz yönteminde maksimum dönüşümü sağlama için daha uzun süre inkübasyon yapmak gerekebilir(20). İdrarda bulunan nitrit ve nitrat mikrobiyal kontaminasyon olmadığı sürece dayanıklıdır. Örneklerin toplanması sırasında idrara antibiyotikler veya izopropanol ilavesinin kontaminasyonu önleyebildiği bildirilmiştir(5).

                    Hücre kültürü

                    Çoğu doku kültür ortamları yüksek miktarlarda nitrat içerir. Bundan dolayı, yüksek miktarda nitrat içeren ortam kullanılmasından kaçınılmalı ve düşük miktarda nitrat içeren ortamlar tercih edilmelidir. Bazı ortamlar ise, özellikle serum içeriyorlarsa, renk oluşumu ile etkileşir ve standart eğrininin doğrusallığında sapmalara neden olur. Bu durumda, gerek stok gerekse dilüsyonu yapılan standart nitrit ve nitrat çözeltileri kullanılan ortamda hazırlanmalıdır. NADPH'ye bağımlı nitrat-redüktaz yönteminde, maksimum dönüşümü sağlamak için gerekli inkübasyon süresinin belirlenmesi ve herhangi bir örnekte dönüşüm için gerekli sürenin belirlenmesi gerekir(20).

                    Plazma

                    İnsan plazmasında bazal nitrit konsantrasyonları "ölçülemeyen", "nM'den fazla (450 nM)" ve "μM'den fazla (26 μM)" gibi ifade edilmektedir(4). Bu kadar çelişkili ifadelerin nedenleri arasında kanların toplanması sırasında kullanılan yöntemler ve/veya ölçüm yöntemleri arasında ki farklılıklar sayılmakta-dır. İnsan da dahil o lmak üzere do kuz farklı memeli türünde üç farklı yöntem ile ölçülen plazma nitrit konsantrasyonlarının 100-600 nM kadar olduğu gösterilmiştir. Sirküle eden nitrit miktarlarının %70-90 kadarının eNOS aktivitesi sonucunda oluştuğu da bildirilmiştir. Araştırıcılar, bazal plazma nitrit konsantrasyonlarının yNOS aktivitesini yansıttığına ve çeşitli memeli türlerinde NO kullanımının benzer şekilde olduğuna dikkat çekmişlerdir. Diğer yandan, plazma nitrat konsantrasyonlarında ki değişmeler NO oluşumunun bir göstergesi olarak değerlendirildiğinde dikkatli olunması gerektiği vurgulanmaktadır; şöyle ki, plazma nitritinden farklı olarak, nitrat konsantrasyonu akut NOS inhibisyonu sırasında anlamlı olarak değişmemekte ve diyet ve renal fonksiyondan etkilenmektedir(4).

                    Plazma örneklerindeki nitrit/nitrat miktarları deproteinizasyon işlemi yapılmadan da ölçülebilir; ancak, plazmanın format-nitrat redüktaz yönteminde distile su, NADPH'ye bağımlı nitrat-redüktaz yönteminde ise sodyum fosfat tamponunda %20 kadar dilüe edilmesi önerilmektedir. Plazmada büyük partiküller bulunuyorsa, etkileşmeyi önlemek için ölçümden önce örnekler santrifüj edilebilir veya filtre edilebilir. Dilüe plazma örneklerinin dönüşüm yüzdesini etkilememesine karşın, plazma Griess reaksiyonundaki nitrit miktarı ile etkileşir ve maksimum absorpsiyon yaklaşık %10 azalır. Bu durumda, distile suda hazırlanan standartlar ve dilüe edilmiş serum karşılaştırılabilir. Nitratın nitrite dönüşümü %95'ten daha azsa, dönüşüm enzimi ile daha uzun süre inkübasyon yapılabilir(20). Plazma örneklerinde yapılan nitrit ölçümünün nitritin hemoglobin ile hızla etkileşerek hatalı sonuçlar verebileceği ileri sürülmüştür(4). Hemsiz plazmada nitritin nitrata dönüşme oranı 5/1 olarak bildirilmiştir. Heparinin de Griess reajanı ilave edildikten sonra çökmesi nedeni ile, Griess reajanı ilave edilmeden önce örneklere az miktarda protamin sülfat ilave edilerek heparinin ortamdan uzaklaştırılması önerilmektedir(19). Kana ilave edilen nitirit miktarının %16'sı kadarı oda sıcaklığında 30 dakika kadar aynı kaldığı, ancak 60 dakikada miktarın %5'ten daha az olduğu bildirilmiştir; 4° C'de ise miktarlar sırası ile %69 ve %55 kadardır. Kandan hemoliz yapılmadan ayrılan plazmada nitrit ve nitratın -20° C'de 1 yıl kadar dayanıklıdır(5).

                    Griess yöntemi ile nitrit miktarlarının ölçülmesi(20)

                    Materyal


                    Griess çözeltisi A: 0.1 g NED/100 ml distile su. 0-4° C'de ışıktan korunarak saklanır.

                    Griess çözeltisi B: 1 g sülfanilamit/100 ml ortofosforik asit (5%, h/h). 0-4° C'de ışıktan korunarak saklanır.

                    Griess reajanı: 1 kısım Griess A çözeltisi + 1 kısım Griess B çözeltisi. Ölçümden hemen önce hazırlanır.

                    10 mM nitrat standardı: Sodyum nitrat çözeltisi (85 mg sodyum nitrat/100 ml distile su). 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    10 mM nitrit standardı: Sodyum nitrit çözeltisi (69 mg sodyum nitrit/100 ml distile su). 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    Yöntem

                    1. 100 μl örnek veya nitrit standart çözeltisi 96 çukurlu bir kültür plağında planlana n çukurlara konulur. Örnek hacmi 100 μl'de n daha azsa, örnek distile su veya ortam çözeltisi ile toplam hacim 100 μl olaca k şekilde dilüe edilir.

                    2. Çukurların üzerine 100 μl Griess reajanıilave edilir, renk oluşumu için oda sıcaklığında 15 dakika beklenir.

                    3. Örnekler ve standartlar için absorbans değerleri 540 nm'de ölçülür. 530-570 nm filtreler de kullanılabilir.

                    4. Örneklerdeki nitrit konsantrasyonu, standart nitrit kalibrasyon eğrisinden yararlanılarak hesaplanır. Sadece nitrit ölçüldüğünde, standart eğri 250 μM'a kadar doğrusaldır.

                    Nitratı nitrite indirgeme yöntemleri

                    1. Enzimatik olmayan


                    İndirgeme için kullanılan yöntemlerden biri, örneğin bakır ile kaplı kadmiyum kolonlardan geçirilmesi veya belli büyüklükteki kadmiyum tozları ile muamele edilmesidir(6). Ancak L-arjinin analoglarının kullanıldığı çalışmalarda Griess reaksiyonu ile nitrit/nitrat düzeyleri ölçüldüğünde, bu maddelerin kadmiyum/bakır ile etkileşip Griess reaksiyonu sonucunda nitrit ile elde edilene benzer bir absorbans verdiği gösterilmiştir(15). Bundan dolayı, bu indirgeme yönteminin kullanılmaması önerilmektedir.

                    2. Enzimatik

                    NADPH'ye bağımlı nitrat redüktaz(20)


                    Nitrat ve nitritin NADPH-nitrat redüktaz (EC 1.6.6.2.) kullanılarak eş zamanlı ölçümü ilk kez Wu ve Brosnan (1992) tarafından tanımlanmıştır. Bu yöntemin esasını nitratın NADPH kullanarak nitrite indirgenmesi ve oluşan toplam nitritin Griess yöntemi ile ölçülmesi oluşturur. Bu yöntemin yüksek miktarlardaki NADP+'nin Griess reaksiyonu sırasında renk oluşumu ile etkileşimini önlemek için Verdon ve ark.30 tarafından modifiye edilen şeklinde ise, bir glukoz-6-fosfat (G-6-F)/G-6-F dehidrojenaz NADPH oluşturucu sistem kullanılmaktadır(20).

                    Nitrat redüktaz

                    NO3- + NADPH + H+→ NO2- + NADP+ + H2O ,

                    G-6-F dehidrojenaz

                    G-6-F + NADP+ + H2O → 6-FG + NADPH + H

                    Materyal(20)

                    14 mM sodyum fosfat tamponu, pH 7.4:
                    101 mg Na2HPO4.2H2O + 20.8 mg NaH2PO4. 2H2O/50 ml distile su. 0-4° C'de saklanır.

                    10 μM NADPH: 1.7 mg NADPH/2 ml distile su. Kullanılırken 100 kat dilüe edilir. Çalışma günü yeni çözelti hazırlanır.

                    Dönüşüm tamponu: 3.8 mg G-6-F/fosfat tamponu (14 mM) + 2 Ü G-6-F dehidrojenaz (son konsantrasyon 400 Ü/l) + 1 Ü NADPH'ye bağımlı nitrat redüktaz (Aspergillus türlerin-de n) (son konsantrasyon 2 00 Ü/ l). Çalışma günü kullanılmadan hemen önce hazırlanır.

                    10 mM nitrat standardı: Sodyum nitrat çözeltisi (85 mg sodyum nitrat/100 ml distile su). 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    10 mM nitrit standardı: Sodyum nitrit çözeltisi (69 mg sodyum nitrit/100 ml distile su). 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    NADPH'ye bağımlı nitrat redüktaz yöntemi ile biyolojik örneklerde toplam nitrit ve nitrat miktarının ölçümü için çeşitli firmalar tarafından geliştirilen ELISA kitleri bulunmaktadır (Nitrate/Nitrite Colorimetric Assay Kit, Cayman Chemical, Katalog no: 780001; Nitric Oxide Assay Kit, Colorimetric, Calbiochem, Katalog no: 482650). Diğer yandan, NOS aktivitesinin nitrit/nitrat üzerinden ölçüldüğü in vitro koşullarda ortamda bulunan fazla miktardaki NADPH'nin Griess reaksiyonu ile etkileşme sorununu gidermek için, laktat dehidrojenazı kullanan ELISA kitleri de geliştirilmiştir (Nitrate/nitrate Colorimetric Assay Kit [LDH Method], Cayman Chemical, Katalog no: 760871; Nitric Oxide Synthase Assay Kit, Colorimetric, Calbiochem, Katalog no: 482702). ELISA kitleri ile hızlı ve güvenilir sonuçlar elde edilebilmektedir.

                    Format-nitrat redüktaz(20)

                    Nitratın format-nitrat redüktaz kullanarak nitrite dönüşümü Taniguchi ve ark.17 tanımladıkları yönteme dayanmaktadır. Destekleyici elektron taşıyıcısı olarak flavin mono nükleotit (FMN) ilave edilir. Oluşan kompleks format-dehidrojenaz aktivitesi (ferrositokrom:nitrat oksidoredüktaz, EC 1.9.6.1) ile FMNH2'ye indirgenir. FMNH2 daha sonra nitrat-redüktaz aktivitesi (frrositokrom:nitrat oksidoredüktaz, EC 1.9.6.1) ile nitratı nitrite indirgemek için kullanılır. Bu reaksiyonlar sonucunda oluşan nitrit miktarları ise Griess yöntemi ile ölçülür. NADPH ve NADP+'nin tersine, FMN Griess reaksiyonu ile etkileşmez(17).

                    Format dehidrojenaz

                    FMN + HCOO- + H2O → FMNH2 + CO2 + OH-

                    Nitrat redüktaz

                    FMNH2 + NO3-→ NO2- + FMN + H2O

                    Materyal(20)

                    0.5 M fosfat tamponu, 0.8 M sodyum for-mat, 0.4 mM FMN tamponu, pH 6.0: 0.61 g N2HPO4.2H2O + 3.36 g NaH2PO4.2H2O + 2.72 g sodyum format + 10 mg FMN-Na.2H2O/50 ml distile su. 0-4° C'de ışıktan korunarak saklanır.

                    Format-nitrat redüktaz (yaklaşık 2-4 kÜ/l): 2 mg protein/ml distile su, 4° C (kullanılmadan hemen önce hazırlanmalı)

                    10 mM nitrat standardı: Sodyum nitrat çözeltisi (85 mg sodyum nitrat/100 ml distile su). 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    10 mM nitrit standardı: Sodyum nitrit çözeltisi (69 mg sodyum nitrit/100 ml distile su. 0-4° C'de ışıktan korunarak saklanır. 0-100 μM standart çözeltileri hazırlanır.

                    E. coli'nin nitrat-redüktaz pozitif, nitrit-redüktaz eksik suşu (suş JCB387 pcnB∆nrf): Yamagutchi [IFO 12433], B suşu veya diğer E. coli suşları gibi diğer suşlar da anlamlı miktarlarda format-nitrat redüktaz içerirler; ancak, bu suşlar kullanıldığında kanamisin çözeltisi ilave edilmemelidir.

                    Lennox L Broth ortamı: 10 g LB Broth bazı+ 5 g KNO3 + 5 g sodyum format + 0.5 g K2HPO4 + 367 μl glisero l distile su ile 450 ml'ye tamamlanır, pH KOH ile 7.2'ye ayarlanır ve son hacim 500 ml'ye tamamlanır. Çözelti 15 psi'de 20 dakika 121° C'de otoklavlanır.

                    Kanamisin çözeltisi: 50 mg kanamisin/1 ml NaCl (%0.9, a/h)

                    Format-nitrat redüktazın hazırlanması(20)

                    1. E. coli (JCB387 pcnB ∆nrf suşu) anae-robik olarak 10 g LB ve 5 μl kanamisin stok çözeltisi içeren 5 ml ortamda 8 saat inkübe edilir.

                    2. Aseptik koşullarda alınan 0.5 ml kültür 500 ml LB ortamına a ktarılır ve bir gece inkübe edilir.

                    3. Kültür ortamı 2000g'de 4° C'de 20 dakika santrifüj edilerek hücreler ayrılır.

                    4. Hücreler 500 ml distile su içinde yeniden süpansiyon haline getirilir ve ortamdan gelen nitrit veya nitratı uza klaştırmak için 2000g'de 4° C'de 20 dakika santrifüj edilerek hücreler yıkanır.

                    5. Yıkama işlemi 2 kez daha tekrarlanır.

                    6. Format-nitrit redüktaz aktivitesini önlemek için hücre pelleti -20° C'de 2-16 saat dondurulur.

                    7. Hücre pelleti (yaklaşık 2 g) 10 ml soğuk distile suda yeniden süspande edilir; süs-pansiyon soğutularak 5 dakika süre ile sonike edilir ve böylece hücreler parça-lanır.

                    8. Zedelenmemiş hücreleri toplamak için so-nikat 2000g'de 4° C'de 20 dakika santrifüj edilir.

                    9. Süpernatan alınır ve membrana bağlı format-nitrat redüktaz içeren membran fraksiyonunu ayırmak için 20000g'de 40 dakika santrifüj edilir. Pellet distile su ile yeniden süspande edilerek ve 20000g'de 4° C'de 40 dakika santrifüj edilerek iki kez yıkanır.

                    10. 8. aşamada elde edilen hücre pelleti verimi artırmak için distile su ile yeniden 7-9. aşamalardaki gibi süspande, sonike ve santrifüj edilir.

                    11. En son elde edilen membran fraksiyonu 1 ml distile suda yeniden süspande edilir ve 1 l distile suya karşı 4° C'de bir gece diyalizi yapılır.

                    12. Diyalizattaki protein içeriği 10 mg/ml'ye ayarlanır. Bu diyalizat doğrudan nitrat-re-düktaz yöntemi için kullanılabilir. Diyalizatın küçük hacimlerde liyofilize edilmesi ve -70° C'de saklanması önerilir.

                    NADPH'ye bağımlı nitrat redüktaz yöntemi kullanılarak toplam nitrit ve nitrat miktarlarının belirlenmesi(20)

                    1. 50 μl örnek, nitrit veya nitrat standart çözeltisi 96 çukurlu bir kültür plağında planlanan çukurlara konulur.

                    2. Çukurların üzerine 40 μl dönüşüm tamponu ilave edilir. Nitritin tek başına ölçümü için, NADPH'ye bağımlı nitrat redüktaz içermeyen dönüşüm tamponu kullanılır.

                    3. Çukurların üzerine 10 μl NADPH çözeltisi ilave edilir.

                    4. Plak çalkalanır ve nitratın nitrite dönüşümü için oda sıcaklığında 45 dakika inkübe edilir.

                    5. Toplam nitrit miktarı Griess yöntemi ile ölçülür.

                    6. Nitrit ve nitrat standart eğrilerinin absorbans değerleri karşılaştırılır. Tipik olarak, 0-100 μM nitrat standart çözeltileri kullanıldığında , nitratın nitrite dönüşümü %95'te n daha fazladır.

                    7. Standart nitrit eğrilerinden örneklerdeki toplam nitrit konsantrasyonu hesaplanır. Hesaplanan değer ortamda bulunan nitrit ve nitratın nitrite indirgenmesi sonucunda oluşan nitrit konsantrasyonlarını ifade eder.

                    8. Toplam nitrit miktarından, ortamda enzim olmadan ölçülen nitrit miktarının çıkarılması ile nitrat miktarı belirlenir.

                    Format-nitrat redüktaz yöntemi kullanılarak toplam nitrit ve nitrat miktarlarının belirlenmesi(20)

                    1. 1 kısım fosfat dönüşüm tamponu, 1.8 kısım distile su ile kullanılmadan hemen önce dilüe edilir. Duyarlılık sorunu varsa, dönüşüm çözeltisinin başlangıçtaki dilüsyonu kullanılmaz ve örnek hacmi 75 μl'ye çıkarılır, bu durumda 15 μl dilüe edilmemiş dönüşüm tamponu kullanılır.

                    2. 50 μl örnek, nitrit veya nitrat standart çözeltisi 96 çukurlu bir kültür plağında planlanan çukurlara konulur.

                    3. Çukurların üzerine 40 μl dönüşüm tamponu ve 10 μl dilüe format-nitrat redüktaz ilave edilir. Karşılaştırma yapabilmek için, enzim yerine 10 μl distile su kullanılır. Çok sayıda örnek olduğunda, enzim dönüşüm tamponuna kullanılmadan hemen önce ilave edilebilir; bu durumda karışımdan 50 μl çukurlara ilave edilir.

                    4. Nitratın nitrite dönüşümü için plak 37° C'de 60 dakika inkübe edilir.

                    5. Toplam nitrit miktarı Griess yöntemi ile ölçülür.

                    6. Nitrit ve nitrat standart eğrilerinin absor-bans değerleri karşılaştırılır. Tipik olarak, 0-100 μM nitrat standart çözeltileri kullanıldığında , nitratın nitrite dönüşümü %95'ten daha fazladır.

                    7. Standart nitrit eğrilerinden örneklerdeki toplam nitrit konsantrasyonu hesaplanır. Hesaplanan değer ortamda bulunan nitrit ve nitratın nitrite indirgenmesi sonucunda oluşan nitrit konsantrasyonlarını ifade eder.

                    8. Toplam nitrit miktarından, ortamda enzim olmadan ölçülen nitrit miktarının çıkarılması ile nitrat miktarı belirlenir.

                    Laboratuvarımızda yapılan çalışmalar

                    Laboratuvarımızda in vitro veya in vivo olarak yaptığımız çalışmalarımızda, gerek fare ve sıçanlardan izole edilen aorta, mezenterik arter, kalp, böbrek, beyin akciğer homojenatları gerekse serum örneklerinde nitrit konsantrasyonları Griess yöntemi ile ölçülmektedir. Kullandığımız yöntemler aşağıda kısaca verilmiştir.

                    Doku homojenatlarının hazırlanması​​​​​​​

                    Doku homojenatlarının hazırlanmasında kullandığımız fosfat tamponu çözeltisinin bileşimi şu şekildedir (g/L): NaCl 8.0; KCl 0.2; Na2HPO4 1.4; KH2PO4 0.2. Dondurulan dokular çözündükten sonra üzerine 0.5 veya 1 ml fosfat tamponu ilave edilerek homojenize edilmektedir. Homojenatlar Eppendorf tüplere aktarılarak 12.100 x g’de 20 dakika santrifüj edilmektedir. Elde edilen süpernatantlar Eppendorf tüplere alınarak, ölçüm yapılıncaya kadar -20° C’de saklanmaktadır(23-25).


                    Bazı çalışmalarımızda doku homojenatlarının hazırlanmasında kullandığımız HEPES tampon çözeltisinin bileşimi ise şu şekildedir (mM): HEPES 20 (pH 7.5); β-gliserofosfat 20; sodium pirofosfat 20; sodium ortovanadat 0.2; EDTA 2; sodyum florit 20; benzamidin 10; ditiyotreyitol 1; 20 mM löpeptin; 10 mM aprotinin. Dondurulan dokular çözündükten sonra üzerine 1 ml HEPES tamponu ilave edilerek homojenize edilmektedir. Homojenatlar Eppendorf tüplere aktarılarak 18.000 rpm’de 4°C'de 10 dakika santrifüj edilmektedir. Elde edilen süpernatantlar Eppendorf tüplere alınarak, üzerlerine 50 μl soğuk Tris (50 mM, pH 8.0) ve KCl (0.5 M) ilave edilerek 15 saniye sonike edilir; ardından 18.000 rpm'de 4° C'de 15 dakika santrifüj edilmektedir. Elde edilen süpernatantlar Eppendorf tüplere alınarak ölçüm yapılıncaya kadar -20° C’de saklanmaktadır(27-29).

                    Nitrit ölçümü

                    Nitrit ölçümü için sodyum nitrit, orto-fosforik asit, NED ve sülfanilamit kullanılmaktadır. Sodyum nitrit, distile su içinde çözülmektedir. Fosforik asidin %85’lik çözeltisinden distile su ile %2.5’lik çözeltisi hazırlanmakta ve +4° C’de saklanmaktadır. Sülfanilamit (%1) ve NED (%0.1), %2.5’lik fosforik asit içinde çözülerek hazırlanmaktadır. Çözeltiler ölçümden hemen önce ayrı ayrı hazırlanmakta, ölçüm sırasında NED ile sülfanilamit çözeltileri karıştırılıp (Griess reajanı) hemen kullanılmaktadır.

                    Serum veya doku homojenatları distile su ile 1:5 veya 1:10 oranında distile su ile dilüe edilmektedir.

                    Standart olarak kullanılacak sodyum nitritin 2 mM şeklinde distile suda hazırlanan stok çözeltisinden, distile su ile 1 ml hacimde seri dilüsyonları (0.25-100 μM) hazırlanmaktadır. Bu çözeltilerden, serum örneklerinden ya da doku homojenatlardan alınan 50 μl örnek 50 μl Griess reajanı ile kültür plağında karıştırılmaktadır. Oda sıcaklığında 10 dakika bekleyen örneklerin verdikleri absorbanslar, kültür plağı okuyucuda 540 nm’de okunmaktadır. Sodyum nitrit konsantrasyonlarına karşı elde edilen absorbanslardan yararlanılarak, doğrusal regresyon yöntemi ile, sodyum nitritin kalibrasyon doğru denklemleri belirlenmektedir. Bu denklemlerden yararlanılarak, örneklerde okunan absorbans değerlerinden nitrit miktarları bulunmaktadır(23-29).

                    Serum nitrit miktarlarından hesaplanan sistemik nitrit oluşumu μM olarak ifade edilmektedir. Doku nitrit oluşumu ise, her bir örnekten elde edilen doku için ölçülen nitrit konsantrasyonlarının, aynı madde uygulanan dokulara ait protein değerine oranlanarak hesaplanmaktadır. Sonuçlar μmol/mg protein olarak ifade edilmektedir.

                    Kaynaklar​​​​​​​

                    1. Alderton WK, Cooper CE, Knowles RG. Nitric oxide synthases: structure, function and inhibition. Biochem. J. 357, 593-615, 2001.

                    2. Archer S. Measurement of nitric oxide in biological models. FASEB J. 7, 349-360, 1993.

                    3. Davidson W, Woof C. Comparison of different forms of cadmium as reducing agents for the batch determination of nitrate. Analyst 1003, 403-406, 1978.

                    4. Dejam A, Hunter C, Schechter AN, Gladwin MT. Emerging role of nitrie in human biology. Blood Cells, Molecules, and Diseases 32, 423-429, 2004.

                    5. Ellis G, Adatia I, Yazdanpanah M, Makela SK. Nitrite and nitrate analyses: A clinical Biochemistry perspective. Clin. Biochem. 31, 195-220, 1998.

                    6. Green LC, Wagner DA, Glogowski J, Skipper PL, Wishnok JS, Tannenbaum SR. Analysis of nitrate, nitrite, and [15N]nitrate in biological fluids. Anal. Biochem., 126, 131-138, 1982.

                    7. Greenberg SS, Xie J, Spitzer JJ ve ark. Nitro containing L-arginine analogs interfere with assays for nitrate and nitrite. Life Sci. 57, 1949-1961, 1995.

                    8. Gross SS, Wolin MS. Nitric oxide: Pathophysiological mechanisms. Ann. Rev. Physiol. 57, 737-769, 1995.

                    9. Hibbs JB, JR, Westenfelder C, Taintor R, Vavrin Z, Kablitz C, Baranowski RL, Ward JH, Menlove RL, McMurry MP, Kuschner JP, Samlowski WE. Evidence for cytokine-inducible nitric oxide synthesis from L-arginine in patients receiving interleukin-2 therapy. J. Clin. Invest. 89, 867-877, 1992.

                    10. Karayannis MI, Piperaki EA, Maniadaki MM. Kinetic determination of nitrite based on the Griess reaction and stopped flow technique, Anal. Lett., 19(1&2), 13-23, 1968.

                    11. Kroncke K-D, Suschek CV, Kolb-Bachofen V. Implications of inducible nitric oxide synthase expression and enzyme activity. Antioxid. Red. Sign. 2, 585, 2000.

                    12. Lefer AM, Scalia R. Nitric oxide in inflammation. In: Physiology of Inflammation, Ley K (ed.), Oxford University Press, New York, p. 447-472, 2001.

                    13. Miranda KM, Espey MG, Jourd’heuil D, Grisham MB, Fukuto JM, Feelisch M, Wink DA. Te chemical Biology of nitric oxide. In: Nitric Oxide: Biology and Pathobiology, Ignarro LJ (ed.), Academic Press, California, p. 41-55, 2000.

                    14. Nagano T. Practical ethods for detection of nitric oxide. Luminescence 14, 283-290, 1999.

                    15. Nithipatikom K, Pratt PF, Campbell WB. Nitro-L-arginine interferes with the cadmium reduction of nitrate/Griess reaction method of measuring nitric oxide production. Eur. Clin. Chem. Clin. Biochem. 34, 133-137, 1996.

                    16. Sawicki E, Stanley TW, Pfaff J, D'Amico A. Comparison of fifty-two spectrophotometric methods for the determination of nitrite. Tantala 10, 641-655, 1963.

                    17. Taniguchi S, Takahashi K, Noji S. Nitrate. In: Methods of Enymatic Analysis, Bergmeyer J, Graβ1 M (eds.), Vol. 7, VCH Verlagsgesellschaft mbH, Weiheim, Germany, p. 578-585, 1985.

                    18. Tarpey MM, Fridovich I. Methods of detection of vascular reactive species. Nitric oxide, superoxide, hydrogen peroxide, and peroxynitrite. Circ. Res. 89, 224-236, 2001.

                    19. Tarpey MM, Wink DA, Grisham MB. Methods for detection of reactive metabolites of oxygen and nitrogen: In vitro and in vivo considerations. Am. J. Physiol. Regul. Integr. Comp. Physiol. 286, R431-R444, 2004.

                    20. Titheradge MA. The enzymatic measurement of nitrate and nitrite. In: Methods in Molecular Biology: Nitric Oxide Protocols, Titheradge MA (ed.), Vol. 100, Humana Press Inc., p. 83-91, 1998.

                    21. Tracey WR, Tse J, Carter G. Lippolysaccharide-induced changes in plasma nitrite and nitrate concentrations in rats and mice: pharmacological evaluation of nitric oxide syntheses inhibitors. J. Exp. Ther. 272, 1011-1015, 1995.

                    22. Tunçtan B, Altuğ S. The use of nitric oxide synthase inhibitors in inflammatory diseases: a novel class of anti-inflammatory agents. Cur. Med. Chem.: Anti-Inflam. & Anti-Allergy Agents 3, 271-301, 2004.

                    23. Tunçtan B, Altuğ S, Uludağ O, Demirkay B, Abacıoğlu N. Effects of cyclooxygenase inhibitors on nitric oxide production and survival in a mice model of sepsis. Pharmacol. Res. 48, 37-48, 2003.

                    24. Tunçtan B, Korkmaz B, Ozveren E, Buharalıoğlu CK. Mitogen-activated protein kinase signalling cascade contributes to endotoxin-induced hyporeactivity via nitric oxide and prostaglandin production in rat thoracic aorta. Experimental Biology 2005, San Diego, CA, March 31 - April 5, Abstract No: 4326, 2005. The FASEB Journal 19(5), A1551, Abstract No: 877.5, 2005.

                    25. Tunçtan B, Ozveren E, Korkmaz B, Buharalıoğlu CK. Calcium/calmodulin dependent protein kinase II contributes to endotoxin-induced hyporeactivity via prostaglandin production in rat mesenteric artery. Experimental Biology 2005, San Diego, CA, March 31 - April 5, Abstract No: 4214, 2005. The FASEB Journal 19(5), A1551, Abstract No: 877.6, 2005.

                    26. Tunçtan B, Uludağ O, Altuğ S, Abacıoğlu N. Effects of nitric oxide synthase inhibition in lipopoly-saccharide-induced sepsis in mice. Pharmacol. Res. 38, 405-411, 1998.

                    27. Tunçtan B, Yaghini FA, Estes A, Malik KU. Inhibition by nitric oxide of cytochrome P450 4A activity contributes to endotoxin-induced hypotension in rats. Experimental Biology 2004, Washington DC, April 17-21, 2004. The FASEB Journal 18(5), A1037-A1038, Abstract No: 680.20, 2004.

                    28. Tunçtan B, Yaghini FA, Estes A, Malik KU. Inhibition by nitric oxide of cytochrome P450 4A expression and activity contributes to endotoxin-induced hypo-tension in rats. 17th National Congress of Pharma-cology, 1st Clinical Pharmacology Symposium & Joint Meeting of the Turkish & Dutch Pharmacolo-gical Societies, Antalya, Turkey, October 17-21, Abstract Book, P69, 2003.

                    29. Tunçtan B, Yaghini FA, Estes A, Malik KU. Prostaglandins inhibit cytochrome P450 4A activity and contribute to endotoxin-induced hypotension in rats via nitric oxide production. Experimental Biology 2004, Washington DC, April 17-21, 2004. The FASEB Journal 18(5), A1034-A1035, Abstract No: 680.5, 2004.

                    30. Verdon CP, Burton BA, Prior RL. Sample pretreatment with nitrate reductase and glucose-6-phosphate dehydrogenase quantitatively reduces nitrate while avoiding interference by NADP+ when the Griess reaction is used to assay nitrite. Anal. Biochem. 224, 502-508, 1995.

                    31. Wong HR, Carcillo JA, Burckart G, Kaplan SS. Nitric oxide production in critically ill patients, Arc Dis Child, 74: 182-189, 1996.

                    32. Wu GY, Brosnan JT. Macrophages can convert citrulline into arginine. Biochem. J. 281, 45-48, 1992.
                    Konu onur tarafından (https://bitkiara.com/vb5/member/993-onur Saat 31 August 2020, 12:52 ) değiştirilmiştir.

                    Yorum yap


                    • #25
                      Nitrik Oksit Arttıran Besinler Nelerdir- Sarımsak Yiyen Neden Yaşlanmaz

                      Yorum yap


                      • #26
                        Cinsel Fonksiyon Bozukluğuna Ne İyi Gelir

                        Yorum yap


                        • #27
                          Çam Kabugu Extractı Nedir-, Pycno Nos Klinik Araştırmaları ve Faydaları Nelerdir

                          Yorum yap


                          • #28
                            Çam Kabuğu Extractı Faydaları Nelerdir- Çam Kabuğu Extractı Pycno Nos

                            Yorum yap


                            • #29
                              Çam Kabuğu Extractı Ne İşe Yarar- Doğal Antibiyotik İçin Ne Kullanılmalı

                              Yorum yap


                              • #30
                                Çam Kabuğu Nedir- Diğer Ürünler ile Bizim Ürünümüz Arasındaki Farklar

                                Yorum yap

                                Hazırlanıyor...
                                X