
Duyuru

Collapse
No announcement yet.

Candida Mantarı

Collapse
Bu konu sabit bir konudur.
X
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Candida Mantarı


    Mantarlar, mycosis, mikozis, mikoz
    Mantar ormanda yetişen zehirli veya zehirsiz, yenen veya yenmeyen mantarlar alka gelmemelidir. Bizim burada anlatmaya çalıştığımız mantar virüsler, bakteriler ve parazitler kadar tehlikeli ve hatta bazen dahada tehlikeli olan deri, nefesyolları, ve bağırsak mantarlarından bahsedeceğiz.

    Mantarlar önce eksojenik (harici) ve endojenik (dahili) mantarlar olmak üzere iki gruba ayırılır. Eksojenik mantarlar deri, tırnak ve ayak mantarları diye üç grupta incelenir. Endojenik mantarlar iki grupta incelenir ve bunlar küf mantarları (aspergillus,) vede maya mantarı candida albicans) Küf mantarı olmadan maya mantarı yaşıyamaz. Küf mantarı ve maya mantarlarının vücuda yerlaşmesi bağırsak florasının tahribatına nedeniyledir.
    Son yıllarda Almanyada sürekli candida albicansın ne kadar tehlikeli olduğundan bahsediliyor, fakat bu mantarın neden bu kadar çok yayılabildiği ve nasıl olupta bir çok hastalığa sebep olduğu konusunda pek birşey yazılmıyor. İşte burada bu konu matarların yayılmasına antibiyotitik ilaçlar (bakterileri öldürürcü) ve antimikozit (mantarları yokedici) ilaçlar ve kortizonlu ilaçlar en önemli etkenler olduğunu göreceğiz.

    Küf mantarı hem faydalı hende zararlıdır.

    a-) Faydaları:
    1-) Tabiattaki artık maddeleri çürütür ve toprağa dönüştürür.
    2-) Hayvan ve bitli artıkları ve ölüsünü vede insanın artılkarını toprağa dönüştürtür.
    3-) İmalat sanayinde üretim aracı olarak kulanılır.
    4-) Vitamiler, enzimler ve antibiyotikler üretümünde kulanılır.

    b-) Zararları:
    1-) Odun, tekstil, kağıt ve besinleri tahripederek milyarlarca zarara sebep olur.
    2-) Bitki hastalıklarının baş sorumlusu olup, meyve ve sebzeleri tahripeder ve milyarlarca zarara sebep olur.
    3-) İnsan ve hayvanlarda enfeksiyon ve allerji başta olmak üzere birçok hastalığa sebep olur.
    4-) Küf mantarlarının üretikleri zehirler (mikotoksinler) kanser başta olmak üzere birçok hastalığa sebep olurlar.

    Mantar türleri:
    Mantarlar likenlerle birlikte yaşarlar. Likenler fotosentezle karbonhidratları üretirler ve mantarlarda su ve mineralleri likenlere sunarlar. Böylece problemsiz birlikte yaşarlar. Antibiyotik ilaçların %25?inin küf mantarından eldeedilir. Bunedenle antibiyotik ilaçlar küf mantarlarının gelişmesi ve yayılması için ideal ortam oluştururlar.
    a-) Maya mantarları: Candida albicans ve kryptokokken en önemlileridir.
    b-) Küf mantarları: Aspergillus türleri, penicillum, mucor, botrytis, fusarium, alternaria ve cladosporium türleri en önemlileridir.

    Mantarların yayılışı:
    1-) Besinlerle küf mantarları yayılır.
    2-) Kimyasal ilaçlar küf mantarlarının yayılmasına sebep olurlar, örneğin penisillin küf mantarından eldeedilmiştir.
    3-) Ağır metaller: Bakır ve civa gibi küf mantarlarının yayılmasına sebep olur örneğin eskiden bakır kaplarla yenen yemeklerden dolatı sıksık zehirlenmeler olmuştur.
    4-) Küf mantarını tenefüs ederek zehirlenme

    Küf mantarı nerede bulunur?
    Ahırları, hayvan bulunan evler, hyvan yemleri, tahıl ambarları, nemli veya yaş odalar, ev tozu, eski koltuklar, eski döşeme, tam olarak kurumamış yeni binalar, ağaç mobilya ve lamimnat gibi tahta döşemelerde kulanılan kimyasal ilaçlar, mutfak, besin depolanan kelerler, klimalar, nemli havanınaolduğu mekenlar, süsbitkileri, bitki artıkları, sabunlar ve kozmetik maddeler, diş macunları, kimyasal ilaçlardan: antibiyotikler, antialarjikler, antihistaminikler, kortizon ve mide-bağırsak ilaçları küf mantarları içerirler. Ayrıca kimyasal meteotlarla hazırlanan ilaçlar örneğin B12-Vitamini, penisilin vb. Küf mantarlarından eldeedilir. Buda fayda yerine zarar verir.

    Mantar hastalıkları:
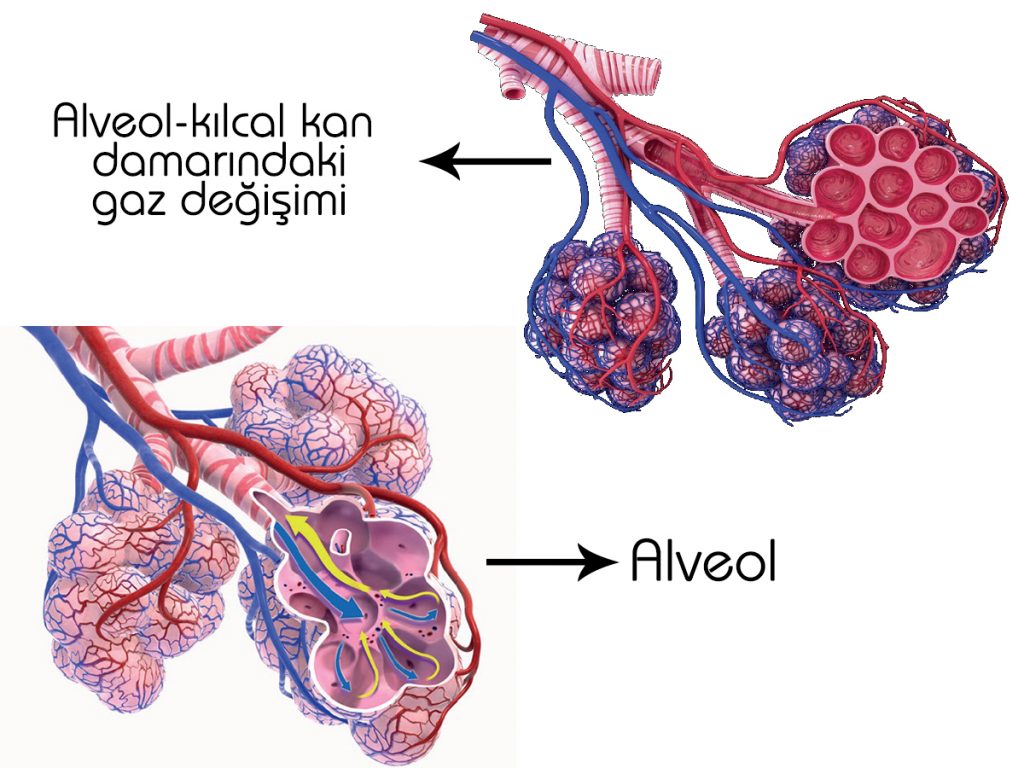
    Deri, tırnak ve ayakta görülen mantar türleri genelikle mukozada mantar olduğuna işarettir. Küf mantarları nefesyolları ve sindirim sistemine, özeliklede mide-bağısak mukozasına yerleşirler. Nefesyollarına yerleşmişse allerji, astım, allerjik bronşit ve mide-bağırsak mukozasına yerleşmişse besinallerjisi, migren, depresyon, hormon anormalikleri vede mide-bağırsak rahatsızlıklarına sebep olurlar.

    Mikotoksinler (mantar zehirleri):
    Kronik bronşit, astım, psödo-krup, bronş karzinomu, ishal, kabızlık, bulantı, besinallerjisi, kronik bağırsak ilt. (enterit), kalın bağırsakilt. (kolit), kalın bağırsak ülseri, psodö-allerji, allerji, allerjik astım, kronik bronşit, enfeksiyon ve çoçuklarda hiperaktifitete neden olur. Buna karşı kulanılan kortizonlu ilaçlar küf mantarının yayılmasına neden olduğundan hastalık dahada karmaşı bir hal alır ve daha başka hastalıklarda ortaya çıkar. Mikotoksinler organizmayı taripeder, mutajenik (genetik değişim yaratan), kanserojen (kanser yapıcı ), ve teratojenik (organ ve dokuların özürlü olmasına sebep olan) etkilere sahiptir.

    Mikotoksinler, mantar zehirleri:
    Küf mantarının zehirlerini yani mikotoksinleri üretmesi besin maddeleri ve hayvan yemleri ile mümkündür. Nemli ekmek hemen küflenirken , kuru ekmek asla küflenmez. Küf mantarı 0-40 derece arasında her zaman mikotoksin salgılıyabilir. Küf mantarının mikotoksin üretimi durdurulamaz, fakat besinler hazırlanırken dikat edilirse küf mantarının yayılması önlenir. En tehlikeli çavdar mahmuzu mantarıdır. Bu mantar ishal, kusma, bulantı, başağrısı, organların ölmesi, sinirlerin tahrip olması, kaslaerda karıncalanma, kramplar, sara vb. Rahatsızlıklara sebep olur.

    Küf mantarının en önemlileri:
    1-) Aspergillus flavus
    2-) Aspergillus fumigatus
    3-) Aspergitus niger
    Bunlar çok tehlikeli mikotoksik maddeler olan: Aflotoksin B1, G1, M1, Patulin, Ocratoksin A, Kojiasidi (Cojiasidi) ve Penisilinasidi üretürler. Bu mikotoksinler: Tansiyon düşürücü, mutajen, teratojen, kanserojenje, nefrotoksik etkiye sahiptirler. Küf mantarlarının üretiği bazı zehirler ise östrojen (dişilik hormonu) gibi etkiye sahiptirler.

    Mikotoksikozlar (Mikotoksinlerin sebep olabileceği hastalıklar):
    İshal, kusma, mide ağrısı, ağız ve yutakta yanma, kas krampları, nefes alış-verişlerini felçe uğratma, nabız zafiyeti, titreme, üşüme, eklem ağrıları, bazı uzuvlarda uyuşukluk, nefes darlığı, sara, hafıza kayıbı, koma, romatizma, MS (multiple skleroz), Parkinson hastalığı, Lupuserythematodes (kılcal damarlardaki patalojik değişiklikler, kronik yorğunluk, hormon anormalikleri vb hastalıklar

    Mikotoksikoz türleri:
    a-) Eksojenik (harici) nedenlerle ortaya çıkan mikotoksikozlar:
    1-) Küf mantarının yayılması, örneğin: Orman, tahıltarlaları ve binalar
    2-) Kimyasal ilaçlar ve ağır metaller, örneğin haşerelere karşı kulanılan ilaçlar.
    b-) Endojenik (dahili) mikotoksikozlar:
    1-) Mikotoksin içeren ilaçlar
    2-) Antimikozitikalar (mantarlara karşı kulanılan ilçlar)
    3-) Küf mantarlarının üretiği besinler

    Bunlardan eksojenik mikotoksikozları tedavi etmek kolaydır. , fakat endojenik mikotoksikozlar çok problem yaratabilir. Endojenik mikotoksikozlar primeri (birinci) ve sekodori (ikinci) olmak üzere iki gruba ayrılır. Primer mikotoksikozlar direkt olarak küf mantarları tarafından sebep olunan rahatsızlıklar olurken sekondori mikotoksikozlar ayrıca bağırsakların, özeliklede ince bağırsağın tashrip olması nedeniyle daha kompleks bir durum ortaya çıkar.

    ASLINDA MANTAR OLMAYAN İNSAN YOK, HER İNSANIN 1 G DEFİ HACETİNDE TAKRİBEN 300-1000 MANTAR BULUNUR. BU PROBLEM TEŞKİL ETMEZ.

    FAKAT İNSANLAR AŞIRI KİMYASAL İLÇALAR KULLANIRLAR İSELWER FAYDALI BAKTERİLER AZALIR YERİNDE MANTAR YERLEŞİR. SADECE ANTİBİYOTİK GİBİ KİMYASALALAR DEĞİL HAZIR GIDSALARDA Kİ KİMYASALLARDA KİMYASAL İLAÇLAR KADAR TEHLİKELİDİR VEYA HİJYENİK OLMAYA BİR TUVALET KULLANDINIZ SİZE MİKROP BULAŞIR VE BÖYLECE PROBLEMLER BAŞLAR.


    Mantarın yoğunluğuna ve türüne göre üretiği toksik maddeler farklı farklı olacağından farklı farklı hastalıkları tetikler. Bunlardan en önmeliside Bağırsak mantarlarının üretiği zehirli gazlar ve zehirli alkoller bağırsakalrı yakar. Bağırsaklar toksik maddeye karşı kendini korumak için yağlanır ve yağlandıkca diaminooksida isimli enzim azalır. DAO azalır ise hitamin yükselir. Histaminin seviyesini durdurmak için doktorların yazdığı antihistaminikler ve kortizonlu ilçalar sadece baskılar ve tedavi etmez. Uzun vadede kortizon kemikleri eriti, hafızaya zarar verir, deriyi inceltir, hormonları bozar, alerjik hastalıkalr ve cilt hastalıkalrını dahada ağırlaştırır. En önmeliside kişi yemek yemesede kilo almaya başlar ve bir daha kilo veremz. Yemek yememesine rağman sürekli davul gibi bir şiş kinlik hasıl olur ve nefes lamakta zorlanır. Hormonları azalacağından cinsel arzularıda azalır. Beyin yeterli ve kaliteli hormon salğılıyamacağından kişi gergin, gerlimli, stresli ve kavgacı olur.

    Örneğin;
    1 g defi hacette 10.000 var ise kişide halsizlik, yorgunluk, omus, sır ve bel ağrıları başlar
    1 g defi hacette 100.000-500.000 mantar var ise kişide alerjik hastalıklar ve cilt hastalıklarına sebep olur
    1 g defi hacette 500.000-1.000.000 mantar olur ise kişide panik atak, ölüm korkusu, depresyon vs görülür.

    Yani hastalığın ağırlığı mantarın yoğunluğu ve türüne göre değişir. Bazı mantar türleri zehirli gazlar üretir. Bunlar şişkinlik, nefes darlığı kalo sıkışması vs yi tetikler. Bazı mantar türleri zehirli alkoller üretir, metil alkol gibi bu alkoller karaciğer yağlanmasına sebep olur. Sonrada damar tıkanıklıkları kalp krizi ve beyin kanaması gibi rahatsızlıkları tetikler.

    Bağırsak mantarını modern tıbbın teşhis edememesi nedeniyle hastalıklar yıllarca anlaşılmaz. Genelikle hastalıkların kaynağının piskolojik, stres, ailevi sebeplerden meydana geldiği varsayımları ile hastalar yıllarca acı çeker. Bağırsak mantarı teşhis edilemez,
    Çünkü;
    1. mantarlar bağırsak mukozasına kene gibi yapışır,
    2. Mantarlar bağırsak mukozasının şeklini ve rengini alır.
    3. Kana karışmadığından kan tahlininde çıkmaz.
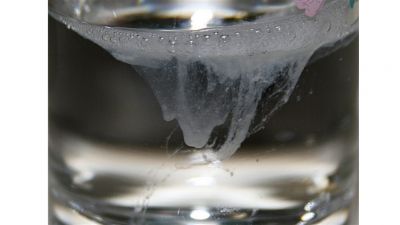
    Oysaki kişi Sabah kalkıldığında bir bardak suya tükürün eğer tükürük dibe çökerse mantar vardır.

    Son yıllarda sessiz ve yıkıcı hastalıklarda patlama yaşandı. Tetkiklere ve testlere bol bol para harcanırken, yanlış ilacların kullanılması çok daha kötü sonuçlara yol açtı. Kimse bağırsaklarından tüm vücuda geçen ve organlarına büyük zarar veren Candida Albicans maya mantarından şüphelenmedi. Kandida'nın neden olduğu obezite, diyabet, kalp damar hastalıkları, hormonal bozukluklar, kanser ve sinir sistemi hastalıkları adeta insanların kaderi haline geldi. Kısaca yanlış ilaç kullanımı, stres, hazır gıdalar önce bağırsaklarımızın doğal florasını bozdu. Bağırsak geçirgenliğini arttırdı. Kanımıza karışan sindirilmemiş maddeler, ağır metaller, katkı maddeleri organlarımıza zarar vermeye başladı. Kandida'nın en önemli belirtisi alkoliklerde ya da sarılıkta olduğu gibi karaciğerde bozukluktur. Çünkü mantarlar şekeri alkole dönüştürür. Bağırsakta mantar enfeksiyonu olan kişilerde genellikle; kabızlık, gaz, kas ağrısı, burun tıkanıklığı, aşırı yemek yemek, yorgunluk, depresyon, sinirlilik, duygu durum bozukluğu, isteksizlik, öksürük, nefes darlığı ve baş ağrısı gibi belirtiler görülür.

    ŞEKERİ ÇOK SEVİYOR
    Beyaz şeker ve beyaz unla beslenen mantarlar, oldukça hızlı çoğalırlar. Zaten Kandida mantarının çoğaldığı ve bağırsak florasının bozulduğuna dair en net belirti tatlıya karşı bağımlılıktır. Gereğinden fazla çoğaldığında ince ve kalın bağırsakta doku hasarına neden olur. Kandidası olan kişilerde gıdalara ve kimyasallara karşı duyarlılık vardır. Bu hasar uzun vadede bağışıklık sisteminin kafasını karıştırır. Ve birçok hastalığın temelini oluşturur. Teşhis edilmesi zor olduğundan çoğu kişi için ciddi bir sorun haline gelmektedir. Kandida mantarından arınarak vücudunuzda varolduğunu düşündüğünüz pek çok hastalıktan ve fazla kilolarınızdan kurtulabilirsiniz. Ancak bu uzun bir tedavi gerektirebilir.

    Vücudu sinsice ele geçiren Kandida Mantar Enfeksiyonu'nun başlıca nedenleri şunlar:
    * Beslenme alışkanlıklarında yapılan hatalar.
    * Şekerli besinlerin fazla miktarda tüketilmesi.
    * Sezaryen ile yapılan doğumlar.
    * Günlük beslenme programında karbonhidratlara ağırlık verme.
    * Gereksiz yere kullanılan antibiyotikler.
    * Yanlış diyetler, faydalı yağların beslenmeden çıkartılması, laksatif ilaç ve çayların çok kullanılması sonucu bağırsak florasının bozulması.
    * Antibiyotik ve kimyasal ilaç kullanımının artması başta olmak üzere yanlış tedavi yöntemleri bu artışa neden oldu..

    Mantarların semptomu (belitileri)
    1-) Maya mantarları şeker ve karbonhidratlarla beslenir ve bunlarda ürettiği zehirli gazlar şişkinlik yapar.
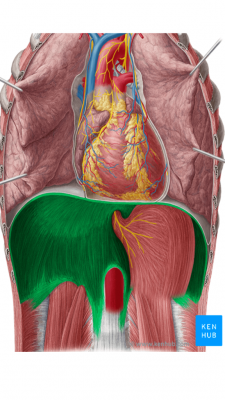
    2-) Nefes darlığı ve kalprahatsızlıkları: Karındaki gaz diyaframı yukarı doğru kalrdırır. Sıkışan akciğer nedeniyle defes darlığı ve sıkışan kalp nedeniylede kalp rahatsızlıkları görülür.
    3-) Dişeti ve dilde beyaz tabakalar oluşur fırcalamave yıkama ile gecsede yenide oluşur.
    4-) Deride kaşıntıya sebep olur.
    5-) Bağırsak mantarlarının aşırı şeker tüketmesi nedeniyle kişinin kanında şeker yetersizliği görülür. Vücudun şeker ihtiyacı giderilemediğinden kişi sürekli şekerli maddeler yer.
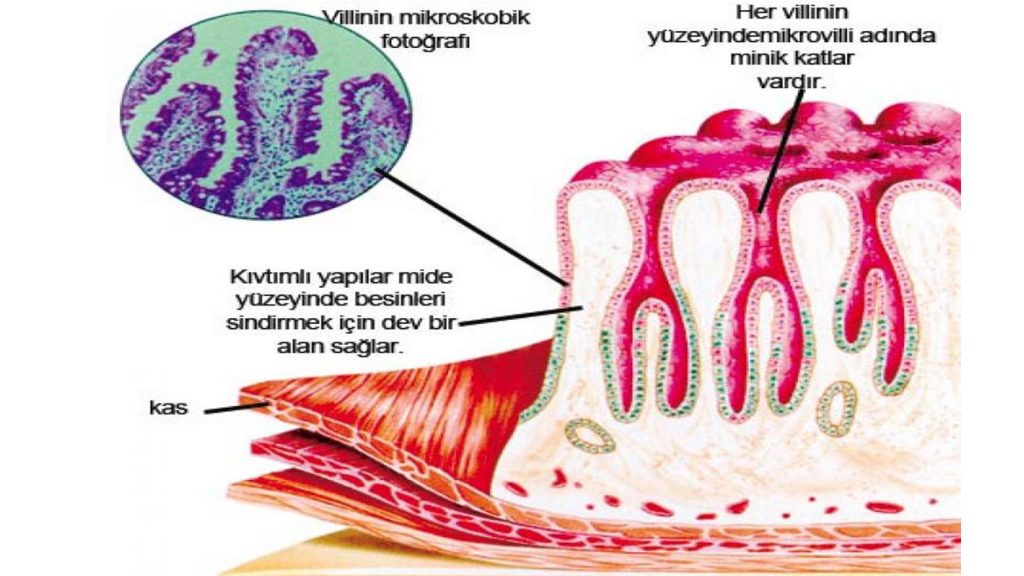
    6-) Bağısaklardaki mantarlar faydalı bakterileri yavaş yavaş yokederek yerini alı. Bu nedenlede kişide kabızlık, ishal vb. Rahatsızlıklar ortaya çıkar.Bu mantarlar sonra idrar yollarına geçer.
    7-) Kişi alkol içmediği halde ağzı alkol kokuyorsa buna bağırsak mantarlarınaın sebep olduğu alkol üretimindendir.
    8-) Kronik mesane ve vajina iltihaplanması:Antibiyotik ilaçlar bakterileri öldürürken mantarların yayılmasına neden olur. Böylece daha tehlikeli ve sıksık iltiplanmalar görülür.
    9-) Eklem ve kas ağrıları: Mnatarların salğıladığı mikotoksinlereklem ve kaslarda yoğunkaşarak ağrılara sebep olur. Bu ağrıların romatizmadanmı mikotoksinlerdenmi olduğu analşılamaz.
    10-) Yorğun dermansız ve konsentre olamama: Vücut sürekli mantarlar ve zehirleri (mikotoksiler) ile uğraşmaktan kendini regenerasyon (yenilem) yapamaz ve kişi genelikle yorğu olur ve konsentre olamaz.
    11-) Cinsel isteksizlik: Kişide enerji yetersizliği olduğundan, buda cinsel isteksizliğe sebep olur. Ayrıca mantarların salgıladığı mikotoksinler hormon beneri etkiye sebep olduğundan kadınlarda kısırlığa dahi sebep olabilir.
    Mantarlar doğum konturol hapları ile dahada çok yayılırlar ,ç ünkü bu onların besinin oluşturur.
    Mantarlar her insanda başka rahatsızlıklara sebep olabilir. Bu nedenle bu rantarın rahasızlığı şu değil denemez.


    Bağırsak Mantarını Teşhis Etme:
    Sabah kalkıldığında bir bardak suya tükürün eğer tükürük dibe çökerse mantar vardır.
    1-) Şişkinlik, kabızlık, ishal, karında şişkinlik
    2-) Makatta kaşıntı ve kızarıklık
    3-) Mide ağrısı ve ağız kokusu,
    4-) Dişte ve dile beyazımsı, sarımsı veya kahverengi pas gibi tabaka varsa mantar var demektir, hiç bir tabaka çokta aşırı kızarmışsa çok yoğun mantar var demektir.
    5-) Aşırı yorğunluk, dermansızlık konsantre olamama, unutkanlık, isteksizlik
    6-) Aşırı tatlı yeme isteği ve aşırı açlık duygusu
    7-) Kasların titremsi ve kas ağrısı
    8-) Nefes darlığı, burun tıkanması, kulak iltihaplanması, sinüzit, faranjit, bronşit
    9-) Ense, omuz, sırt ve bel ağrısı
    10-) Eklem ağrısı ve şişmesi, dokularda ağrı (fibromiyalji), sle
    11-) Deride sivilce, saçların yağlanması, deride kuruma, akne inverse, sedef, ekzem
    12-) Küf gibi pis bir koku ve bayanlarda beyazımsı veya sarı akıntılar
    13-) Adet halinde aşırı ağrılar mantar enfeksiyonu nedeniyle
    14-) Kolit, ülseratif kolit, morbus kron, ibs ve enterit gibi iltihaplı rahatsızlıklar
    15-) Kronik böbrek yetmezliği, mesane iltihaplanması, instersistiyel sistit, cinsel isteksizlik, prostatit, vajinit
    16-) Mikotoksinler migren, baş ağrısı, depresyon ve panik atakı tetikler
    17-) Diabet, kolesterol ve yüksek tansiyonu tetikler
    18-) Kurdeşen, kaşıntı, polen alerjisi, besin alerjisi, alerjik astım, atopik ekzem
    19-) Skleroderma, otiszm, alzeimer, Parkinson ms (multiple skleroz)

    Küf mantarı nasıl teşhis edilir?
    Defi-hacet testi: Defi-hacettenin (dışkı ) değişik noktalarından alına nümuneler laboratura gönderilir ve inceleme sonucunda mantar bulunursa tedaviye başlanır. Çoğu zaman defi-hacet testi yeterli olmamakta ve ve kişideki mantarlar teşhis edilememektedir. Bu nedenle şüpheli durumlarda kann testi yapılmalıdır. Hemagglutinasion test, yani kanda İmmünglobulin Tip M (İgM) kanda bir hafa gibi kısa süreli devriye görevi yapar, şayet İgM kanda varsa mantarda var demektir. İmmünfloreszenz testi: Buradakanda immünglobulin Tip G (İgG) olup olmadığına bakılır, şayet varsa vücutta bir aydır mantarlara karşı mücadele olduğunu gösterir.

    Küf mantarının tedavisi:
    1-) Besinlerin bozulmadan atrılması gerekir, bozulunca tehlikelidir.
    2-) Evin temiz tutulması ve küf mantarından korunması
    3-) Kimyasal ilaçlar, özeliklede küf mantarının yayılmasın sebep olabilecek penisili ve kortizonlu ilaçlardan uzak durlmalıdır.
    4-) Spor yapılmalı
    5-) Hijyene dikkatedilmeli

    Küf mantarı ve maya mantarı (cadida albicans), Unutulmamalı küf mantarı (aspergillus ve diğerleri) olmadan, maya mantarları (candida albicans ve diğerleri) yaşıyamazlar ve manatarların yayılmasında Epstein Bar Virüsü çok önemli rol oynar.
    6-) Mantarları azdıran Beyaz unmamüleri; ekmek, mantı, makarna, tatlı yiyecekler ve tatlı içeceklerden uzak durulmalıdır.Talı yiyecek ve içecekler vede hamurlu yiyecekler mantarların ana besinlerini oluşturur.Tatlı yiyeckler sadece baklava çikolata değil, kavun, karpuz ve üzüm gibi tatlı meyvelerde mantarları besler.

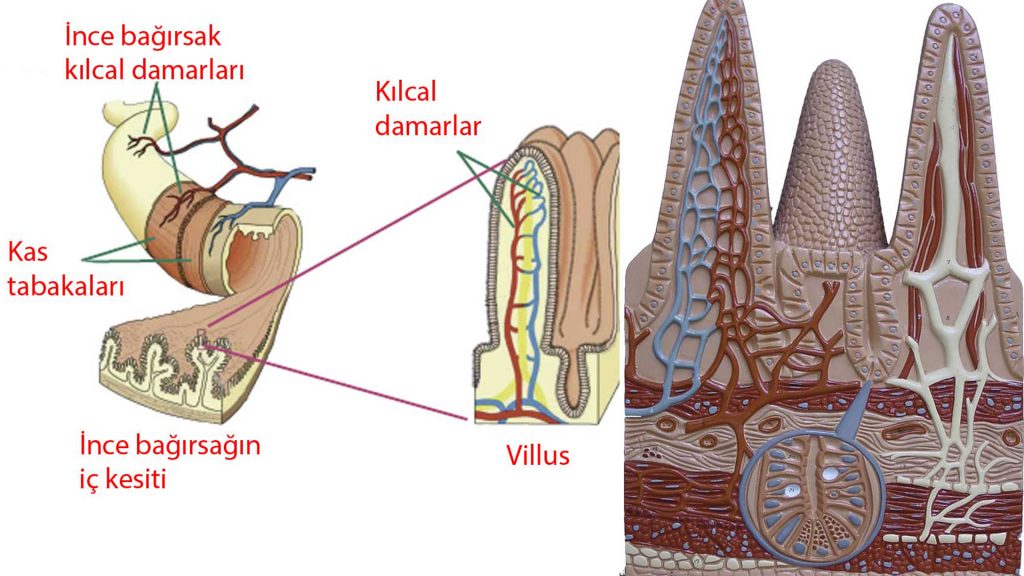
    Bağırsak florası ve kılcal kan dolaşımı sağlıklı yaşayabilmek için çok önemlidir. Çünkü vitamin, mineral, aminoasit, enzim, glikoz, vb, besleyici maddenin hazırlanması, hücrelere ulaşması ve de mikroplarla mücadele eden makrofaj, T ve B- Hücreleri gibi savunma mekanizmalarının hücre aralarında dolaşması buna bağlıdır.Tabii doğru beslenirseniz tedavi sürecide o oranda kısalır.

    Allerji ve şişkinliğin sebei bağırsak mantarlarıdır: Sibel hanım tam 10 yıl yakalandığı amansız hastalıklar ki bunların başında özeliklede meyve, fındık, fıstık vb yiyeceklere karışı allerji, iltihaplı hastalıklar ağrılar vb,. Frankfurt ve çevresindeki kliniklerde gitmediği uzman doktor kalmaz. Fakat doktorlar hastalığına teşhis koyamazlar, kız kardeşi bana bunun ne olabileceğini sordu. Bende şayet yemekten sonra şişkinlik oluyorsa, allerjisi varsa ve kalbinde sıkışma gibi haller oluyorsa mutlaka bağırsak mantarı vardır vebunu teşhis etmek çok zordur dedim. Sibel hanım doktoruna bağırsak mantarı olup olmadığının teşhis edilmesini istemiş, doktorları buna biz karar veririz derelersede bayanın diretmesi karşısında bir düzine araştırmadan sonra bağırsakalarında 45 cm lik bir kısmın tamamen tahrip olduğunu ve hemen amaliyat olması gerektiğini söylemişler ve amaliyat etmişlerdir.

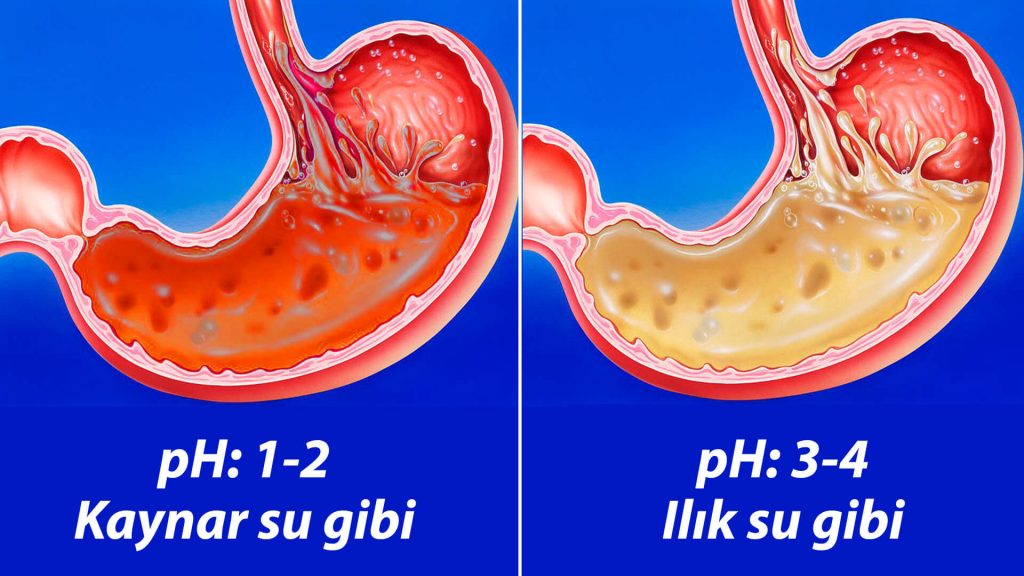
    Mantarların üretmiş olduğu toksik maddeler nedeniyle vücudun pH değeri bozulur ve kanın pH=7,40 yani hafif bazik, bu değerde % 0,2 bir asitlenem dahi hayati tehlikeye sebep olduğundan asit minerallerle asitik baz’a (curuf) dönüştürülerek vücudun zayıf noktalarına depolanır.Depolanan bu curufa önce ölü mikroplar ve hücreler yapışarak büyür ve sonra içerisine canlı mikroplar yerleşir ve toksik madde üreten merkezler oluşur. Sadece mantarlar değil, tatlı, hamurlu (beyaz un mamüleri), şarkuteri (sucuk, salam, sosis), çay, kahve, kola ve katkı maddesi içeren hazır yiyecek ve içecekler vede festfood asidoza sebep olur.Bozulan pH dengesini sağlamak için geçici olarak Sodyumbikarbonat almak iyi olur.Asitli ortam (asidoz) bağışıklık sisteminin zayıflaması ve mikropların çoğalması ve hastalıkların tedavi edilemez bir hal alması demektir.

    Bilindiği gibi kaşıntı, kurdeşen, polen-, ve besin alerjisi, akne, sedef, ekzem vb. deri hastalıkları, nefesdarlığı, astım, faranjit, behçet, romatizma, ankilozan spondilit, saçkıran, kabızlık, ishal, kolit vb. mide bağırsak rahatszılıklarının ana sebebi mantarlardır.Hatta kanserin sebebinin de mantarlar olduğunu onkolog Dr. Simoncini ispatlamış ve yıllardır tedavi edilemeyen kanser hastalarını 3-4 günde tedavi etmiş ve 100 yıldır kanser üzerine yazılıp çizilenlerin mesnetsiz olduğunu belgelemiştir.Peki mantarlar bu kadar çok hastalığa sebep oluyorda neden teşhis ve tedavi edilemiyor, çünkü mantarlar bağırsak mukozasına sülük gibi yapışıyor ve buradan vücudun her noktasına ulaşıyor.Bu nedenlede yapılan tahlillerde mantar görünmüyor.Doktorlar da herhangi bir bakteri, virüs veya mantar yok o halde sizin rahatsızlığınız tamamen piskolojik nedenler den kaynaklanıyor, bunun sebebi ailevi, stres, depresyon vs diyerek.Hastalara antidepresanlar yazmaktlar.Hastalar perişan olmaktadır.Almanyada dünyanın en modern mikrobiyoloji labaratuarını kurmuşlar benim o zamanki doktorum buraya bir kaç defa benim def-i hacetimi gönderdi ve incelediler.Doktor ibrahim bey sizde asla mantar yok dedi.Ben ona bakın bütün belirtileri var, sadece mantar bakteriden farklı olarak bağırsak mukozasına yapışır ve çıkmaz, bu nedenlede teşhis edilemez ve nadiren mantarlar mukozayı tamamen tahrip edince teşhis edilebilir.

    Asla peynir yememeli, çünkü asidoza ve iltihaplanmaya sebep olur.Siyah çay, kahve ve kola içilmemeli, çünkü bağırsakları kurutur ve vitamin, mineral ve aminoasitlerin alımını (absorbesini) önler.Alkol ve sigaranın zararları belli kanser, damarların yağlanması vb, artı uzun süre bira içilirse cinsel ikdidarsızlık ve hatta kısırlığa sebep olmaktadır.Sucuk salam sosis gibi et mamullerine 5-6 ay ara vermek gerekir (sade temiz et az yenilebilir) çünkü asidoza sebep olmaktadır.Bu da birçok hastalığın ana kaynağıdır.Akşam yemeği yerine yoğurt, meyve veya salata yenilebilir veya sebze çorbası içilebilir.Hayvansal besinler, patates, tahıl (beyaz pirinç), bakliyat ve hamurlu yiyecekler, özelikle de tatlılar akşam yenirse tam sindirilmez ve zamanla problemlere sebep olur.Ne kadar beyaz pirinç, patates, hamurlu yiyecekler, tatlı yiyecek ve içecekler, o kadar yağ oluşturur.Çünkü nişasta glikoza (şekere) dönüşür, şekerde yağa dönüşerek vücutta depolanır.Şeker ve antibiyotikler bağırsak mantarları çoğaltır, mantarlar ise her türlü hastalığı tetikler.Tatlı deyince akıla baklava, çikolata, dondurma vs gelir, kavun, karpuz ve üzümde tatlıdır ve bunlarda mantarı tetikler, çünkü aşırı şeker içeriler.

  • #2
    DİKKAT!!! FAZLA VE ZAMANSIZ YENİLEN MEYVE ZEHİRLEYEBİLİR
    Meyve Diyabet, Yüksek Tansiyon, Kronik Yorgunluk, Halsizlik, Dermansızlık, Obezite, Karaciğer Yağlanması, İktidarsızlık, Cinsel İsteksizlik, Kısırlık v hatta dokularda özelikle de bağı dokusunda yağlanmaya sebep olur böylece kişinin hareketlerini sınırlar değil koşmak yürümekte bile zorlanabilir ve Beynin Fonksiyonlarını bozar ve Bağırsaklardaki zararlı mikropları özelikle de CANDİDAYI BESLER. Bu nedenle Meyve en fazla günde bir adet ve Akşam yemeğinden en az 4 Saat önce tüketilmelidir. Fruktoz Alkol gibi Karaciğeri, Beyni bozar ve kanda ürik asit seviyesinde artış, böbrek taşı, gut ve kanser gibi hastalıkların tetiklediği bilimsel araştırma yayınlanmıştır.

    ​​Sağlıklı beslenmek için meyveleri rahat rahat tüketirken vücudumuza bolca meyve şekeri yani fruktoz alıyoruz. Her yönüyle faydalı diye düşündüğümüz meyvelerdeki fruktozun fazlası bakın vücudumuzda nelere yol açıyor!

    FRUKTOZ NEDİR?
    Fruktoz, vücudun enerji ihtiyacını karşılamak için kullandığı basit bir şeker. Meyve, sebze ve balda doğal olarak bulunuyor ve basit şekerler içinde en tatlı olanı. Glikoz vücudun tüm hücrelerinde kullanılırken, fruktoz sadece karaciğer için gerekli ve bunun miktarı da günlük 15 gram.

    FAZLASI DOĞRUDAN YAĞA DÖNÜŞÜYOR
    Meyve ve sebzelerin yanı sıra yemeklerde tüketilen beyaz şeker, yani sakkaroz, enzimler tarafından parçalanarak glikoz ve fruktoza ayrışır. Glikoz hemen kana karışıp kan şekerini yükseltir, yükselen kan şekerini dengelemek için pankreas insülin salgılar, insülin glikozun bir miktarını alıp vücudun enerji ihtiyacı olan hücrelerine, bir kısmını da sonradan enerji ihtiyacı olduğunda kullanılmak üzere depolanması için karaciğere aktarır.

    Fruktoz ise rafine şeker kaynaklı da olsa, mısır şurubu kaynaklı veya meyve kaynaklı da olsa incebağırsaktan emilerek karaciğere taşınır. Meyve suyunda lif sayısı az olduğu için hızlı emilip kana geçer ve tokluk hissini meyveden daha erken yaratır ve çabuk da acıktırır. Ayrıca bir defada yenilebilecekten daha fazla sayıda meyveyle elde edildiği için kalori değeri ve fruktoz oranı meyveye göre yüksektir. Meyve suyu içmek yerine doğrudan meyve yemeyi tercih etmek daha doğrudur. 1 porsiyon meyvede ortalama 10-15 gram şeker bulunur ve bunun %50-60’ı fruktozdan gelir. 1 adet elmadaki şeker miktarı 10 gram ve bunun 6 gramı fruktoz. Yani günde 2-3 adetten çok meyve yememelisiniz. Bundan fazlasının karaciğer tarafından doğrudan yağa dönüştürüleceğini unutmayın.

    Fruktozun insülin salgılatıcı özelliği olmadığından vücutta kullanımı için insüline ihtiyaç duyulmaz. İnsüline ihtiyaç olmadığı için pankreas insülin hormonu üretmez. Bu pankreasın fazla yorulmayacağını düşündüren iyi bir durum gibi görünse de insülin üretilmedikçe tokluk hormonu olarak bilinen leptin üretiminin gecikeceği ve dolayısıyla fruktozun doyma hissini geciktireceği gerçeği göz ardı edilmemelidir. Birçok kişinin meyvenin kendilerini doyurmadığı, aksine acıktırdığı söyleminin altında bu gerçek yatmaktadır.

    2012 yılında Kaliforniya Üniversitesi'nde yapılan bir çalışmada, iki grup fare üzerinde fruktoz bazlı bir deney gerçekleştirildi. Her iki grup da 6 hafta boyunca içme suyu olarak fruktoz solüsyonu tüketti. Bazı farelere ayrıca omega-3 yağı, DHA ile birlikte keten tohumu yağı verildi. Araştırmacılar yüksek takviyeli fruktozun beyin fonksiyonu üzerindeki etkisini ve DHA’nın olumsuz herhangi bir etkiye karşı çıkıp çıkamadığını ölçmek istemişti.

    BEYİN FAALİYETLERİ YAVAŞLADI
    Sadece fruktoz verilen farelerin metabolizmasında yavaşlama ve beyinlerindeki sinaptik aktivitelerde (beyin hücreleri arasındaki aktivasyon seviyesi) düşüş gözlendi. Beyin hücreleri sinyal göndermekte sıkıntı yaşadı ve bu da farelerin sağlıklı düşünme becerisini bozdu. 6 hafta önce labirentte kolayca gittikleri yolu hatırlamakta bu kez zorluk çektikleri gözlemlendi. Sadece Fruktoz verilen fareler, "insülin direnci", bir başka deyişle ‘Tip 2 diyabet’ özelliği geliştirme emareleri sergiledi. Kaliforniya Üniversitesi'ndeki bilim adamları, yaptıkları deneyin sonucunda yüksek dozdaki fruktozun, hücrelerin enerjiyi nasıl kullanıp depolayacağını ayarlayan insülin becerisini bloke edebildiğini düşünüyorlar.

    FRUKTOZ TÜKETİMİNİ SINIRLAMAK İÇİN 6 NEDEN

    1. TOKSİNE DÖNÜŞÜYOR:
    Fruktoz sadece karaciğerde metabolize edilebilir ve vücut hücreleri tarafından enerji için kullanılamaz. Bu nedenle fruktozun fazlası vücut için toksin niteliğindedir, çünkü karaciğer fazla miktarda alınan fruktozdan kurtulmak için onu yağ hücrelerine dönüştürerek yağ dokusuna gönderir.

    2. ALKOLLE ETKİSİ AYNI:
    Vücuda alınan aşırı fruktoz, karaciğerde insülin direnci oluşturmanın yanı sıra yağlı karaciğer hastalığı gibi karaciğer için zararlı olabilecek durumlara neden olur. Gerçekte fruktoz, karaciğer için önemli bir zehir etkisi olduğu bilinen alkolle tamamen aynı etkilere sahip.

    3. HASTALIKLARA SEBEP:
    Fruktoz ürik asit üretimini artırır ve bu durum gut hastalığı, böbrek taşı hastalıkları ve hipertansiyonun kötüleşmesi gibi durumlara sebep olur. Alınan fazla fruktoz miktarı; karaciğere zarar vermesinin yanısıra dislipidemi diye adlandırılan kandaki lipit partiküllerinin artması ile sonuçlanan kronik bir hastalığa sebep olur. Bu hastalık kalp hastalıkları için önemli bir risk faktörüdür. Tek başına aşırı fruktoz, metabolik sendrom (diyabet, obezite, kalp hastalığı) ile ilgili tüm sorunlara neden olabilir.

    4. ZARARLI BAKTERİLERİ ÇOĞALTIYOR:
    Vücut hücrelerinin çoğu fruktozu enerji kaynağı olarak kullanamazken, bağırsak florasındaki bakteriler früktozdan enerji üretebiliyor. Bu durum ise, fazla fruktoz yüzünden bakterilerin aşırı çoğalmasına ve patojen bakterilerin büyümesine zemin hazırlıyor.

    5. İŞTAH KESİLMİYOR:
    Yüksek fruktoz tüketimi hızla leptin direncine neden olur. Leptin normal kiloyu korumak için iştah ve metabolizmayı kontrol eden bir hormondur. Buna bağlı olarak, yüksek miktarda fruktoz alımı; leptin direncini arttırarak iştahın açılmasına sebebiyet verir.

    6. BEYNİ OLUMSUZ ETKİLİYOR:
    Aşırı fruktoz ayrıca beyin işleyişini de önemli ölçüde etkiler. Yapılan deneyler sonucunda fruktozun özellikle beynin iştahla ilgili merkezini direkt etkilediği ve farelerde hafızayı bozduğu gösterilmiştir.

    Yorum yap


    • #3
      SİSTEMİK TEDAVİ İÇİN YENİ ZORLUKLAR MANTAR ENFEKSİYONLARI

      GERALD MEDOFF
      ST. LOUIS, MISSOURI


      Sorunun tanıtılması ve tanımlanması
      Dramatik tıbbın yanı sıra modern tıbbın bir paradoksudur. organ nakli de dahil olmak üzere cerrahi prosedürlerdeki gelişmeler,yoğun bakımda teknolojinin artan karmaşıklığı, kanser kemoterapisindeki gelişmeler ve geniş spektrumun gelişimi antibiyotiklerin sıklığında dramatik bir artış olmuştur. Hastanede ve toplumda edinilen sistemik mantar enfeksiyonları. Tabii ki, HIV salgını ve bireylerin toprak mantarlarına maruz kalmasına ve bunun sonucunda enfeksiyona neden olan nüfusumuzun artan kentleşmesi gibi diğer faktörler önemli katkılardır. Bu artışa. İstatistikler endişe verici. invaziv sıklığı kandidiyazis on kat artarak dördüncü en yaygın hastanede yatan hastalarda kan izolatı (1). İnvaziv pulmoner aspergilloz, kemik iliği nakli alıcılarında önde gelen bir ölüm nedenidir (2) ve kriptokokal menenjit vakalarının sayısı en az on kat artmıştır ve bu hastalarda yaklaşık %70-80 oranında görülmektedir.
      AIDS (3). Daha önce olduğu gibi Pneumocystis carinii'yi bir mantar olarak kabul ederseniz (4) önerilmişse, Pneumocystis pnömonisi hala önde gelen ölüm nedenlerinden biri olduğu için rakamlar daha da etkileyicidir. AIDS'li hastalar. Toplumdan edinilmiş sistemik mantar ile ilgili olarak enfeksiyonlar, yayılmış histoplazmoz vakalarının sayısı ortaya çıkar gibi olası olmayan yerlerde meydana gelen çok sayıda ile artacak New York City (5) ve son zamanlarda büyük bir artış oldu. Batı kesiminde koksidiyoidomikoz vakalarının sayısı Amerika Birleşik Devletleri (6).

      Antifungal ajanlar için artan pazar nedeniyle artan yaygınlık nedeniyle, ilaç şirketleri yeni mantar önleyici ilaçlar geliştirmeye teşvik edildi ve son 25 yılda, önemli sayıda yeni ajan eklendi.
      en eski ve en etkili antifungaller olan polienler.

      *TABLO 1
      Sistemik Enfeksiyonları Tedavi Etmek İçin Kullanılan Antifungal Ajan Sınıflarının Etki Mekanizmaları
      HEDEFLER SINIF AJANI
      DNA ve RNA sentezi Pirimidin Flusitozin
      Hücre zarı Polien Amfoterisin B
      Ergosterol sentezi Triazoller Flukonazol
      (14 X Demetilaz) İtrakonazol
      * Referans 7'den değiştirilmiştir.

      aşağıdakileri listeleyen zarif bir yakın tarihli incelemeden (7) alınan bir özettir. Önemli antifungal ajan sınıfları ve bunların mantar hücresi. Tabloyu en çok kullanılan ajanlarla sınırladım.
      Günümüzde yaygın olarak sistemik mantar enfeksiyonlarını tedavi etmek için kullanılmaktadır. En faydalı ve sık kullanılan iki antifungal ajan amfoterisin B ve flukonazoldür. Flusitozin nadiren kullanılır ve sistemik tedavi için hemen hemen her zaman amfoterisin B ile kombinasyon halinde maya enfeksiyonları (kandidemi, kriptokok menenjit). Önemli bir Buradaki nokta, en önemli iki ilaç sınıfının (polienler ve triazoller) hem mantar hücre zarlarını etkiler hem de bir sınıf (triazol) diğerinin zara bağlanma bölgesi olan ergosterol sentezini inhibe eder. Sınıf (polienler). Bu noktaya daha sonra mümkün olanlardan bahsederken döneceğim. mantarların bu ilaç sınıflarının her ikisine karşı çapraz direnci. Elbette ek etkili antifungal ajanların mevcudiyeti çok avantajlı olmuştur. Sistemik tedaviyi iyileştirdi mantar enfeksiyonları ve triazoller gibi oral ajanlar basitleştirildi terapi ve ayaktan hastalar için yaygın olarak kullanılabilir hale getirdi. Ancak, bu bedelsiz elde edilemez. Antifungal ihtiyacının artması tedavisi, amfoterisin B kullanımının genişlemesine yol açmıştır ve bunun sonucunda toksisitesi ve gerçek endikasyonları için saygı kaybı. bu daha kolay elde edilebilen triazoller, neyin gerçekçi göstergeler oluşturduğuna dair net bir fikir olmaksızın ayrım gözetmeksizin kullanılmıştır. Giderek, bu ajanlar profilaktik veya ampirik olarak kullanılmaktadır. Hastalık için ciddi risk altında olmayan hastalar. Bu farklı değil antibakteriyel ajanlarla ilgili durum ve mantarlarda artan direncin benzer bir sonucu tahmin edilebilir olmalıydı. Böylece, bir ikinci paradoks ortaya çıktı. tedavisindeki gelişmeler yeni ajanların eklenmesi ile sistemik mantar enfeksiyonları, bu ajanların uygunsuz kullanımına ve öngörülebilir bir direnç görünümüne neden olmuştur.

      Genel olarak, antifungallere karşı direnç, şimdiye kadar olduğundan daha az yaygın olmuştur. antibiyotiklere bakteriyel direnç. Bununla birlikte, mantar enfeksiyonlarında ilaç tedavisinin başarısızlıklarına ilişkin son deneyimler, antifungal testlerin performansı ve standardizasyonundaki gelişmelerle bir araya geldi. Duyarlılık, antifungal direnç sorununa dikkat çekmiştir. Antifungallerin aşırı kullanımının klinik ve antibiyotiğe dirençli bakterilerde bulunanlara benzer epidemiyolojik durumlar. Bu nedenle, her antifungal ajanın bir en azından bazı patojenik türleri hariç tutan aktivite spektrumu mantarlar, her bir ajanın kullanımı, bunların seçimine ve büyümesine yol açabilir. Konakta doğuştan dirençli mantarlar. Örnekler Candida lusitaniae'dir ve Amfoterisin B'ye dirençli Fusarium, (8) Candida krusei ve Flukonazole dirençli Aspergillus. (9) Bununla birlikte, antifungal direncin ana etkisi, belirli bir mantar cinsinin veya türünün doğuştan gelen direnci düzeyinde değil, gelişme ile olmuştur. normalde duyarlı olan türler veya suşlar içindeki direnç.En çok ilgili olan bu sorundur ve bu tartışmayı en sık görülen iki soruna karşı direncin gelişimi üzerinde odaklayacağım. Kullanılan antifungal ajanlar, amfoterisin B ve flukonazol.


      RESİM. 1. Hidrojen bağı oluşumunun (A) ve spesifik olmayan şematik gösterimi amfoterisin B ve steroller arasındaki etkileşimler (B)

      MÜCADELE TEDAVİSİ SİSTEMİK MANTAR ENFEKSİYONU


      RESİM. 2. Amfoterisin B'nin ökaryotik hücreler üzerindeki konsantrasyona bağlı üç etkisi en sık ikisine karşı direncin gelişimi üzerine tartışma kullanılan antifungal ajanlar, amfoterisin B ve flukonazol.

      Amfoterisin B ve Flukonazole Direnç
      Amfoterisin B


      Amfoterisin B'nin mantarlara karşı seçici toksisitesinin, içeren memeli hücre zarlarına kıyasla ergosterol içeren mantar hücre zarlarına tercihli bağlanmasından kaynaklanır.
      kolesterol. Brajtburg ve diğerleri (10) tarafından yapılan bir incelemeden alınan Şekil 1A ve referans 11'deki bir modele göre çizilmiş, amfoterisin B'nin nasıl olduğunu gösterir.


      RESİM. 3. Katalazın amfoterisin B'nin neden olduğu hemoliz üzerindeki etkileri.* = 1 jxg/ml amfoterisin B; D = 2 jig/ml amfoterisin B

      ve steroller, H20'nin katılımıyla ortaya çıkan bir "kafes" oluşturabilir. hidrojen bağlarından. Hem ergosterol hem de kolesterol 3-f3-hidroksidir steroller ve amfoterisin B ile reaksiyonlarının olduğu varsayılabilir. içeren hidrojen bağları eşdeğerdir. Yedi konjuge çift bağın katı zincirini içeren ikinci etkileşim türü. Amfoterisin B ve tüm sterol molekülü, van der tarafından yönetilir.
      Waals kuvvetleri (spesifik olmayan kuvvetler) ve Şekilde şematik olarak gösterilmiştir. 1B. Görünen o ki, özgüllük için van der Waals kuvvetleri belirleyicidir. Amfoterisin B'nin konformasyonel durumu olan ergosterol'e bağlanması Bu tür bir etkileşim için en uygun olanıdır. Amfoterisin B'nin sağlam hücrelerle etkileşimi en az üç etkiler (12). Bunlar Şekil 2'de gösterilmiştir. Çok düşük konsantrasyonlar Timidinde bir artışla ölçüldüğü gibi hücresel fonksiyonları uyarır DNA'ya dahil olma ve hücre gibi diğer bazı parametreler Bölünme ve protein sentezi. Amfoterisinin uyarıcı etkileri B, in vivo olarak kanıtlanmış immünoadjuvan etkileriyle ilgili olabilir (13) amfoterisin B ile uyarılmış antikor sentezi, hücresel bağışıklık ve enfeksiyonlara ve tümörlere karşı direncin artmasıyla gösterilmiştir (14,15). Ara konsantrasyonlar, zarın bariyer fonksiyonunu bozarak hücre içi hücre kaybına yol açar. potasyum ve protonların hücre içine eşzamanlı hareketi. Bunlar
      membran geçirgenliğindeki değişiklikler fungistatik etkileri açıklayabilir amfoterisin B. Muhtemelen uyarıcıya karışmazlar. etki, çünkü her biri farklı amfoterisin B konsantrasyonlarında pik yapar.


      RESİM. 4. Amfoterisin B'nin minimum inhibe edici konsantrasyonlarının karşılaştırılması
      Ölümcül olmayan fungemilere neden olanlarla bağışıklık sistemi baskılanmış hastalarda ölümcül enfeksiyonlara neden olan mayalar. Gruplar arasındaki fark anlamlıdır (p <0,005)

      Ölümcül veya mantar öldürücü etkiler en yüksek amfoterisin B'de ortaya çıkar. konsantrasyonları ve amfoterisin B ile indüklenen oksidatif bazlı olabilir hücre lizisine neden olan membran hasarı (16). Şekil 3 sunar Amfoterisin B'nin iki konsantrasyonu tarafından indüklenen lizizinin, amfoterisin B tarafından inhibe edildiğini göstererek bu hipotez için bazı kanıtlar kuluçkalara eksojen katalaz eklenmesi. Amfoterisin B'ye direnç olağandışı olmakla birlikte, birkaç dirençli sırasında çoğunlukla daha az yaygın türlerden olan izolatlar geri kazanılmıştır. kandidiyazisli hastaların tedavisi. Bununla birlikte, ölüm üzerinde önemli bir etkisi olan daha yaygın suşlarda direnç gelişebilir. Washington Üniversitesi'ndeki grubumuz bir olay olduğunu bildirdi. amfoterisin B ile tedavi edilen nötropenik hastalarda daha yüksek mortalite enfeksiyon için minimum inhibe edici konsantrasyonlar (MIC) olduğunda C. albicans, MIC'leri 0.8 [kg/ml'nin altında olan suşlarla enfekte olmuş benzer hastalarla karşılaştırıldığında, ml başına 0.8 mikrogramdan daha büyüktü (17). Bu, Şekil 4'te gösterilmektedir.


      RESİM. 5. Ergosterol biyosentez yolu

      Amfoterisin B'ye dirençli kandida izolatlarında belirgin bir azalma var Amfoterisine duyarlı izolatlar ile karşılaştırıldığında ergosterol içeriğinde farklılık gösterir (18). Bu, laboratuvarda direnç için seçilen izolatlarda ve ayrıca klinik izolatlarda doğrudur ve bu muhtemelen artan direnç için bir açıklama. Başka bir olası açıklama direnç için amfoterisin B'nin penetrasyonunun azalmasıdır.
      hücre zarındaki bağlanma bölgelerine mantar hücre duvarı. Artan onarım zar hasarı veya hücre içi K+'nın yenilenmesi yoluyla pompa aktivitesindeki artış başka bir açıklama olabilir. İlginç
      Washington Üniversitesi'nden Dr. Janina Brajtburg'un bulgusu şudur: direnç, artan hücre içi katalaz aktivitesi ile korele idi amfoterisin B'nin neden olduğu oksidatif hasarı azaltabilir (18).
      Mantarlardaki amfoterisin B direncinin temelini anlamak için daha fazla çalışmaya ihtiyaç olduğu açıktır. Umarım, mekanizmaları anlamak bu önemli sorunla mücadele için stratejilerin geliştirilmesine olanak sağlayacaktır.

      Flukonazol

      Flukonazol en sık kullanılan antifungallerden biri haline gelmiştir. çok çeşitli klinik durumlarda ajanlar. Antifungal direnç bu triazol bulundu ve artıyor. üç çeşit ilaca karşı direnç gözlemlenmiştir:
      1. Candida glabrata ve Candida krusei, iki maya izolatı Flukonazol tedavisinin düşünüldüğü az sayıda hastada doğal olarak düşük Flukonazol duyarlılığı ortaya çıkabilir. Orası ayrıca bağışıklığı baskılanmış hastalarda Aspergillus enfeksiyonlarının artan bir prevalansıdır ve bu enfeksiyonlar doğal olarak dirençlidir. Flukonazol (2).
      2. Flukonazole dirençli Candida suşları, Flukonazol ile tedavi edilen hastalarda önceden duyarlı olan suşların yerini alır. Bu özellikle AIDS'li hastalarda veya ilaç tedavisi gören nötropenik hastalarda yaygındır. Flukonazol profilaktik olarak (19).
      3. Tek bir Candida albicans suşu ile kalıcı olarak enfekte olan birkaç hasta, daha sonra tedavi süresince klinik direnç kanıtı (20). Son kriptokok enfeksiyonunda benzer fenomen raporları endişe verici (21) Bu sorun esas olarak tedavi gören AIDS hastalarında ortaya çıkmıştır. uzun süreli Flukonazol profilaksisi. Direnç için olası mekanizmalar aşağıdaki gibidir:
      1. Flukonazolün azaltılmış birikimi yaygın bir sorun gibi görünmektedir. Flukonazole birincil ve/veya ikincil direnç mekanizması. Böylece, Flukonazole dirençli iki C. albicans suşu azalmıştır.
      Ön tedavi duyarlılığına kıyasla hücre içi Flukonazol seviyeleri artan MIC'lerle korele olan suşlar (7). dayanıklı suşlar, Itrakonazol duyarlılığı açısından farklılık göstermiştir. itrakonazol
      mantarlar üzerinde aynı etki mekanizmalarına sahip başka bir triazol Flukonazol, ancak farmakolojik özellikleri farklıdır. Bazı dirençli suşlar, Itrakonazole duyarlılığı korudu ve diğerleri yapmadı.
      Bu nedenle, vakaların çoğunda birincil ve ikincil direnç Flukonazol, flukonazolün azalmış birikiminden kaynaklanıyor gibi görünmektedir; molekül. Bu tür veriler ve Itrakonazol ile korelasyon eksikliği duyarlılık, membran taşınmasında farklılıklar olduğu anlamına gelir. hidrofobisitesindeki farklılıklarla tutarlı olarak, iki ilacın bu bileşikler.
      2. Hedefin seviyelerindeki veya duyarlılığındaki değişikliklerden kaynaklanan direnç enzim, Şekil 5 (7)'de gösterilen 14 ac demetilaz. Kanıt var Bunun meydana geldiği, ancak taşıma mutasyonlarından daha az sıklıkta olduğu. Bu direnç mekanizmasının nadiren ortaya çıkmasına rağmen, etkileri nedeniyle birkaç dakika düşünmeye değer. Gen duplikasyonu nedeniyle artan enzim seviyeleri, artan ergosterol sentezi ve buna bağlı olarak azalmış hassasiyet tüm azollere. Hücre zarında artan ergosterol seviyeleri amfoterisin B'ye duyarlılığı da azaltabilir. Bu, en az bir klinik izolatta gösterilmiştir (22). Demetilaz veya kurtarma yollarındaki mutasyonlar azalabilir tüm azollere duyarlılık ve başka bir sterol sentezine yol açan, hücre zarındayken, amfoterisine duyarlılığı azaltır B. Bu, laboratuvarda seçilmiş bir mutantta gösterilmiştir. Saccharomyces cerevisiae (23), ancak henüz bir hastalıkta tanımlanmamıştır. klinik izolat. Bu nedenle, bir azol ile muamele edilerek bu tür bir direncin seçilmesi, aşağıdakilerin her birine dirençle sonuçlanabilir. polienler de dahil olmak üzere şu anda mevcut mantar önleyici maddeler, çok endişe verici bir olasılık.

      Mantar direnciyle başa çıkma stratejileri
      1. Halk Sağlığı Stratejisi. Bu strateji, antifungal ajanlar sadece endike olduklarında. Bu benzer bir Antibakteriyel ajanların uygunsuz kullanımını azaltmak için formüle edilen strateji. Aynı başarı düzeyi ile karşılaşması muhtemeldir çünkü yürütmek çok zor.
      2. Hücre zarfını etkilemeyen yeni ajanların geliştirilmesi. Tablo 1'de gösterilen ajanlar listesinden açıkça görülmektedir ki, 5FC hariç, tümü hücre zarfını doğrudan veya dolaylı olarak etkiler. Bu nedenle, direnç gelişimindeki örtüşme teorik olarak mümkün ve laboratuvarda kanıtlanmıştır. Esastır Tek aşamalı gelişmeyi önlemek için mantar hücresinin diğer organellerini veya özelliklerini etkileyen yeni antifungal sınıfları geliştirilmelidir. çoklu antifungal ajanlara karşı direnç.
      3. Halihazırda mevcut olan ajanların moleküler yapısındaki değişiklikler penetrasyonu, bağlanmayı vb. artıran veya toksisiteyi azaltan. bu ikincisi daha yüksek dozların verilmesine izin verecektir. Yapıyı değiştirme çabaları amfoterisin B molekülünün başarısızlığı nedeniyle değiştirilmiş moleküllerin azaltılmış etkinliği veya artan toksisitesi ev sahibi (24). Bu strateji aynı zamanda daha yeni uyuşturucu formları geliştirmeyi de içerir. Toksisiteyi azaltan ve daha yüksek dozların verilmesine izin veren teslimat. Amfoterisin B'nin yakın zamanda geliştirilen yeni lipid formülasyonları,
      bu stratejinin örnekleri (24). Ne yazık ki, bu pek olası değil stratejisi, dirençli mantarlardan geçici bir rahatlamadan fazlasını sunacaktır. o Bu yeni müstahzarların toksik seviyelerinin bile ötesinde gerekli önleyici konsantrasyonların artmasından önce çok kısa bir süre olacaktır.
      4. Mekanizmaları anlamamıza dayalı yeni stratejiler mantarların patojenitesi. Bu açıkçası en iyi uzun vadeli strateji ve temel araştırma için güçlü bir gerekçedir. patojenitesi ise mantarlar en azından kısmen spesifik yapışmanın varlığına bağlıdır moleküller, daha sonra bu moleküller veya analoglar kullanılarak bağlanmanın önlenmesi mümkün olabilir.

      Özet
      Özetle, sistemik mantar sıklığındaki son artış enfeksiyonlar yeni antifungal ajanların gelişimini uyarmıştır. Hangilerinin kullanımı daha kolay ve toksisitesi azaltılmış. bu var kullanımının artmasına neden olmuş ve bununla birlikte antifungal ajanlara dirençli mantarlar. Tıp camiası olacak Bu yeni ortaya çıkan sorunla uzlaşmak için.

      REFERANSLAR
      1. Fraser VJ, Jones M, Dunkel J, Storfer S, Medoff G, Dunagan WC. Kandidemi bir üçüncü basamak hastane: epidemiyoloji, risk faktörleri ve mortalite öngörücüleri. Klinik Bilgisi Dis 1992;15:414-421.
      2. Pannuti CS, Gingrich R, Pfaller MA, Kao C, Wenzel RP. Nozokomiyal pnömoni Kemik iliği nakli olan hastalar. Atfedilebilir mortalite ve risk faktörleri. Kanser 1992;69(11):2653-62.
      3. Kovacs JA, Kovacs AA, Polis M, et al. Edinilmiş immün yetmezlik sendromunda kriptokokoz. Ann Intern Med 1985;103:533-538.
      4. Edman JC, Kovacs JA, Masur H, et al. Ribozomal RNA dizisi, Pneumocystis carinii'nin mantarların bir üyesi olduğunu gösterir. Doğa 1988;334:519-522.
      5. Saltzman SH, Smith RL, Aranda CP. Risk altındaki hastalarda histoplazmoz Endermik olmayan bir ortamda edinilmiş immün yetmezlik sendromu. Göğüs. 1988;93:917-921.
      6. Stevens DA. Koksidiyoidomikozun klinik belirtileri ve tedavisi tehlikede olan hasta. İçinde: Warnock DW, Richardson MP, ed. Mantar enfeksiyonu tehlikede olan hasta. İngiltere: John Wiley & Sons; 1982:199.
      7. Bossche HV, Marichal P, Odds FC. İlaç direncinin moleküler mekanizmaları mantarlar. Mikrobiyolojide Trendler 1994;2:393-400.
      8. Merz Çalışma Grubu. Candida lusitaniae: iyileşme sıklığı, kolonizasyon, enfeksiyon ve amfoterisin B direnci. J Clin Microbiol 1984;20(6):1194-95.
      9. Oranlar FC. Mayaların azol türevi antifungallere direnci. J Antimikrobiyal Chemother 1993;31(4):463-71.
      10. Brajtburg J, Powderly WG, Kobayashi GS, Medoff G. Amfoterisin B: etki mekanizmalarının mevcut anlayışı. Antimikrobiyal Ajanlar ve Kemoterapi 1990;34:183-188.
      11. Herve M, Dubouzy JC, Borowski E, Cybulska B, Gary-Bobo CM. rolü steroller ile etkileşimlerinde polien makrolidlerin karboksil ve amino grupları
      ve seçici toksisiteleri. 31 P-MR Çalışması. Biochem, Biophys Açta 980:261-272.
      12. Bratjburg J, Elberg S, Medoff J, Kobayashi GS, Schlessinger D, Medoff G. Amfoterisin B'nin L hücreleri üzerindeki uyarıcı, geçirgenleştirici ve toksik etkileri. antimikrobiyal
      Ajanlar Chemother 1984;26:892-897.
      13. Little JR, Plut EJ, Kotler-Brajtburg J, Medoff G ve Kobayashi GS. İlişki amfoterisin B metil esterin antibiyotik ve immünoadjuvan etkileri arasındaki ilişki. bağışıklık. 1978;15:219-224.
      14. Brajtburg J, Elberg S, Kobayashi GS, Medoff G. Toksisite ve direnç indüksiyonu kendilenmiş fare suşlarında amfoterisin B tarafından Listeria monocytogenes enfeksiyonuna karşı.
      Infect Immun 1986;54:303-307.
      15. Valeriote F, Lynch R, Medoff G ve Kumar BV. Amfoterisinin koruyucu etkileri Spontan ve transplante edilebilir murin tümörlerine karşı B. J Natil Canc Inst
      1976;56:557-560.
      16. Sokol-Anderson ML, Brajtburg J, Medoff G. Amfoterisin B kaynaklı oksidatif hasar ve Candida albicans'ın öldürülmesi. J Inf Dis 1986;154:76-83.
      17. Toz WG, Kobayashi GS, Herzig GP, Medoff G. Amfoterisin B'ye dayanıklı maya Ağır bağışıklığı baskılanmış hastalarda enfeksiyon. J Med 1988;84:826-832'yim.
      18. Sokol-Anderson M, Sligh JE Jr, Elberg S, Brajtburg J, Kobayashi GS, MedoffG. rol Candida albicans'ın oksidatif hasara karşı hücre savunmasının amfoterisin B'nin öldürme etkisi. Antimicrob Ag Chemother 1988;32:702-705.
      19. Bart-Delabesse E, Boiron P, Carlotti A, Dupont B. Candida albicans genotipleme Flukonazole direnç geliştiren AIDS hastalarıyla yapılan çalışmalar. J Clin Microbiol 1993;31(11):2933-2937.
      20. Powderly WG, Keath EJ, Sokol-Anderson M, Robinson K, Kitz D, Little JR, Kobayashi G. Amfoterisin B dirençli cryptococcus neoformans olan bir hastada AIDS. Infect Dis Clin Pract 1992;1:314-316.
      21. Jandrositz A, Turnowski F, Hogenauer G. Skualen epoksidazı kodlayan gen Saccharomyces cerevisiae: klonlama ve karakterizasyon. Gen 1991;107(1):155-160.
      22. Kelly SL, Kuzu DC, Corran AJ, Baldwin BC, Kelly DE. Eylem ve direnç modu 14-alfa-metilergosta-8 oluşumu ile ilişkili azol antifungallerine, 24 (28)-dien 3-beta 6-alfa diol. Biyokimyasal ve Biyofiziksel Res Comm 1995;207(3):910-915.
      23. Medoff G, Brajtburg J, Kobayashi GS, Bolard J. Tedavide faydalı antifungal ajanlar
      24. Brajtburg J, Powderly WG, Kobayashi GS, Medoff G. Amfoterisin B: teslimat sistemler. Antimikrobiyal Ajanlar ve Kemoterapi 1990;34:381-384.

      TARTIŞMA
      Richard Duma, Florida: Yıllar içinde kesinlikle çok katkıda bulundunuz. mantar tedavisi. Amfoterisin B kombinasyonu ile ilgili yorumları merak ediyorum. ve immidazoller, özellikle flukonazolün profilaktik olarak kullanıldığını gördüğümüz için amfoterisin B'yi eklemek zorundayız. Bununla ilgili düşünceleriniz nelerdir? kombinasyon? Son zamanlarda bu ilaçların yararlı olup olmadığı hakkında çok şey yazıldı. antagonistik veya gerçekten sinerjik veya katkı maddesi değil. Düşüncelerin neler?
      Medoff: Pekala, mantar izolatlarındaki duyarlılık testi yakın zamanda standardize edildi. Duyarlılık veya duyarlılık üzerine önceki literatürü yorumlamak gerçekten çok zordur.
      Soruyu incelemek için standart tekniklerin olmaması nedeniyle ilaç kombinasyonları. Biyolojik anlamda, sentezi engelleyen bir ajanın olması beklenir. ikinci bir ajan için reseptör bölgesinin küçültülmesi, iki ajanın bir arada bulunması durumunda kötü bir sonuçla sonuçlanacaktır.birleştirildi ve durumun böyle olduğunu gösteren in vitro veriler var. Diğer taraftan,kombinasyonlarını kullanan kişiler hakkında literatürde anekdot raporları vardır. denemelerde amfoterisin ve mükemmel bir etkiye sahip olduklarını iddia ediyorlar. Benim kendi eğilimim, antagonizma olasılığı nedeniyle bu ilaç kombinasyonunu kullanmamaktır. John Utz, Napoli: Her zamanki düşünceli incelemeniz için teşekkürler Jerry. antifungal tedavinin durumu. neden olduğu konusundaki düşüncelerinizi bizimle paylaşır mısınız? aspergillusun çeşitli antifungal ajanlara karşı çok büyük bir direnç şu anda kullanıyoruz?
      Medoff: Bu çok zor ve mantıklı bir soru Jack. Aspergillus bir Şimdi özel bir sorun çünkü o her yerde bulunan bir organizma. nedenini bilmiyorum aspergillus amfoterasine çok dirençlidir. Tüm mantarların farklı lipid bileşenleri vardır. onların hücre zarında. Bununla ilgili olabilir.
      Robert J. Glaser, Menlo Park: İlk histoplazmoz vakasının Panama'da Darling tarafından 1904'te tanımlandığı konusunda haklı olduğuma inanıyorum. 1945'te Chris Zarafonatis, daha sonra
      Michigan Üniversitesi, dünya literatüründeki tüm vakaları o zaman özetledi. nokta. Toplam 77 kişi vardı ve ikisi hariç hepsi ölümcül bir şekilde sona erdi ve ikisi hala hayatta olan hastalar ölümcül hastaydı. Zarafonatis'in yazısının ortaya çıktığı sıralarda, Dünya Savaşı sırasında, Amos Christie ve Vanderbilt'teki meslektaşları, pulmoner kalsifikasyonlu birçok askeri askerin negatif olduğunu bildirdi. tüberkülin testleri, ancak histoplazmin pozitifti. O zaman hemen değildi Spektrumun bir ucunda hastalığın neden yüzde 100 ölümcül göründüğünü ve diğer uçta, geçmiş hastalık kanıtı olan birçok kişi vardı. uzun değildi,ancak, hafif ve hatta orta derecede ciddi hastaları tanımaya başlamadan önce histoplazmozdan muzdarip olduğu tespit edilen ancak devam eden akciğer hastalığı iyileşmek için; iyi bir sayı o kadar hafif bir enfeksiyona sahipti ki hastalık neredeyse geçti farkedilmeden. O zaman, elbette, tedavi için uygun bir antibiyotik yoktu. Histoplazmoz ile mevcut durum, bir anlamda ortaya çıkan sorunları yansıtmaktadır. ilerleme ile. İmmünosupresif ajanların mevcudiyeti önemli olmuştur. organ nakli hastalarının başarısı, ancak diğer yandan immünosupresif ajanlar Açıkça bireylerin enfeksiyona duyarlılığını arttırır, genellikle organizmalarla sağlıklı bireylerde hastalık üretmeye uygun değildir. AIDS'in ortaya çıkışı, olgunun en dramatik örneği olmuştur.

      Medoff: Evet, orijinal vakanın Leischmaniasis olduğu düşünülüyordu ve sadece yeni mantarın tanımlandığı slaytların gözden geçirilmesi. Ted Woodward, Baltimore: Bu tarihsel tartışmaya girmem gerekiyor. sevgilim okulumuza gitti ve 1903 yılında mezun oldu. histiyositler (makrofajlar). sahip olduğu için ün kazanmış olan Ronald Ross, Sıtmanın sivrisinek bulaşmasını anlattı, Panama'yı ziyaret etti. Ross ile baktı Sevgilim mikroskop altında "genç adam, bir vücuduna benzeyen bir vücudun var" dedi. Hindistan'da Binbaşı Leischmann ve Kaptan Donovan (LD organları) tarafından tarif edilmiştir." Yani Sam Darling yemi aldı ve bozukluğu protozoal bir hastalık olarak tanımladı. sevgilim gözlendi altı ay içinde diğer iki hasta, klinik çalışmaları yaptı, otopsi yapar ve kendini karalar. 1933 yılına kadar DeMonbreun'un Nashville'deki mantarı, bugün kullanılan Sabaroud's adlı besiyerinde yetiştirerek izole etti. medya. Sonra her zaman olduğu gibi bir mantar hastalığı oldu. Bu arada, Darling o zaman sıtma konusunda dünyadaki otoritelerden biri olmaya devam etti. Maalesef kaybetti Orta Doğu'da sıtma konusunda Birleşmiş Milletler'e danışırken Bir
      otomobil 1925'te tam olarak dönemedi ve anında öldü. kopyalarım var Darling'in Panama'da yaptığı klinik ve patolojik notlar. istersen ben kopyalarını size gönderecektir. Medoff: Buna minnettar olurum. Çok teşekkürler.
      Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
      Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

      Yorum yap


      • #4
        Entegre bir Silico ve Biyolojik Tarama Platformu Kullanılarak Sesamum indicum'dan Sesamin'in Güçlü Bir Antifungal Ajan Olarak Tanımlanması

        Khushbu Wadhwa , Metodoloji , Doğrulama , Biçimsel analiz , Araştırma , Veri kürasyonu , Yazma - gözden geçirme ve düzenleme , 1 Hardeep Kaur , Metodoloji , Doğrulama , Biçimsel analiz , Araştırma , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , 1 Neha Kapoor , Kavramsallaştırma , Metodoloji , Yazılım , Doğrulama , Biçimsel analiz, Soruşturma , Veri iyileştirme , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , Denetim , 2, * ve Simone Brogi , Kavramsallaştırma , Metodoloji , Yazılım , Doğrulama , Biçimsel analiz , İnceleme , Veri iyileştirme , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , Denetim 3, *
        Francisco Torrens, Akademik Editör
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        1 Fungal Biyoloji Laboratuvarı, Ramjas College, Delhi Üniversitesi, Delhi 110007, Hindistan
        2 Kimya Bölümü, Hindu Koleji, Delhi Üniversitesi, Delhi 110007, Hindistan
        3 Eczacılık Bölümü, Pisa Üniversitesi, Via Bonanno 6, 56126 Pisa, İtalya
        * Yazışma: ni.ca.ud.udnih@roopakahen (NK); ti.ipinu@igorb.enomis (SB); Tel.: +91-011-27667184 (NK); +39-050-2219613 (SB) İlişkili Veriler

        Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
        Git: Soyut


        Antifungal ilaçların sınırlı mevcudiyeti ve ilgili yan etkileri nedeniyle ve ilaca dirençli suşların isyanı göz önüne alındığında, yeni antifungal ajanlara acilen ihtiyaç duyulmaktadır. Bu tür etkenleri belirlemek için entegre bir hesaplamalı ve biyolojik tarama platformu geliştirdik. Antifungal ilaç keşfinde umut verici bir ilaç hedefi olarak değerlendirdik ( ekzo-1,3-β-glukanaz) ve biyoaktif doğal ürünlerden oluşan bir fitokimyasal kütüphane kullanılmıştır. Bu ürünler, ilaç benzeri profilin değerlendirilmesiyle birlikte moleküler yerleştirme ve moleküler dinamik teknikleri kullanılarak seçilen hedefe karşı hesaplamalı olarak tarandı. Potansiyel bir antifungal profil ve tatmin edici ilaç benzeri özelliklere sahip en umut verici fitokimyasal olarak sesamini seçtik. Sesamin , MIC/MFC'yi hesaplayarak ve pazarlanan ilaç flukonazol ile sinerjistik deneyler yaparak birkaç Candida türünün büyümesini engelleme kabiliyetini test etmek için bir ön biyolojik değerlendirmeye tabi tutuldu . Tarama protokolünün ardından, sesamin'i potansiyel bir ekzo olarak belirledik.-1,3-β-glukanaz inhibitörü, Candida türlerinin büyümesini doza bağımlı bir şekilde inhibe etme potansiyeline sahip (sırasıyla MIC ve MFC 16 ve 32 µg/mL). Ayrıca, sesaminin flukonazol ile kombinasyonu, ilgili sinerjistik etkileri vurguladı. Açıklanan tarama protokolü, mantar enfeksiyonlarına karşı yenilikçi terapötiklerin geliştirilmesine giden yolu açan, ilginç bir tahmin edilen farmakolojik profil gösteren, potansiyel yeni bir antifungal ajan olarak doğal ürün sesamin'i ortaya çıkardı. Özellikle, tarama protokolümüz antifungal ilaç keşfinde yardımcı olabilir.

        Anahtar Kelimeler: sanal tarama, bilgisayar destekli ilaç keşfi, antifungal ajanlar, Candida türleri, ekzo -1,3-β-glukanaz, sinerjizm
        Git: 1. Giriş


        Candida , diyabet, kanser, AIDS, organ nakli ve diğer bağışıklık sistemini baskılayan durumlardan muzdarip bağışıklığı baskılanmış hastalarda dünya çapında önemli miktarda ölüme neden olan fırsatçı bir mantar patojenidir. Candida , hem yüzeysel hem de sistemik enfeksiyonlarda yer alan en baskın mantar patojenidir ve hastanede yatan hastalarda en sık izole edilen üçüncü kan dolaşımı patojenidir [ 1 ]. Candida albicans ve C. glabrata , C. parapsilosis , C. tropicalis ve C. krusei gibi gelişmekte olan albicans dışı Candida (NAC) türlerioral ve vajinal mukozanın yüzeysel enfeksiyonlarının yanı sıra yayılmış kan dolaşımı ve derin doku enfeksiyonlarına neden olabilir [ 2 ]. Azoller ve polienler gibi antifungal ajanlar konakçıda ciddi yan etkiler ve toksisite sergiler; bu nedenle, yeni antifungal ajanları keşfetmeye acil bir ihtiyaç vardır. Şu anda, mantar enfeksiyonlarının tedavisi için sınırlı antifungal ilaçlar mevcuttur ve ilaca dirençli suşların ortaya çıkışı artmaktadır [ 3 ]. Antifungal ilaç keşfinde ümit verici bir ilaç hedefi, ekzo -1,3-β-glukanaz [ 4 ] tarafından temsil edilmektedir . Bu enzim, Candida spp.'nin hücre duvarının yeniden şekillenmesinde yer alır . [ 5 ]. Candida'nın hücre duvarıspp. doğada oldukça dinamiktir ve hücrenin en dış tabakasını oluşturur. Hücrenin şeklini ve bütünlüğünü korumaya yardımcı olur ve konakçı hücrelerle çeşitli etkileşimler oluşturur [ 6 ]. Candida türlerinin hücre duvarı . esas olarak dış fibriler tabakayı oluşturan polisakkaritler, glukan, kitin ve mannandan oluşur. Hücre duvarının merkezi çekirdeği, kitin ve galaktomannan'ın kovalent olarak bağlandığı β-1,6 dal noktalarına sahip dallı bir glukan olan bir β-1,3-glukan polimerinden oluşur. Mannanlar genellikle proteinler ve lipidlerle ilişkilidir ve toplam hücre duvarı polisakkaritlerinin %30-35'ini temsil eder [ 7 , 8].]. Hücre duvarı montajı sırasındaki hücre duvarı proteini işlevi, konakçı hücreye yeniden şekillenme ve yapışma, abiyotik yüzey, biyofilm oluşumu, epitel dokularının istilası için çok önemlidir ve ayrıca konakçı bağışıklık sistemlerinin mekanizmasından kaçmada çok önemlidir. Buna ek olarak, hücre duvarı, genellikle hücre duvarının yeniden modellenmesinde yer alan kitinazlar, glukanazlar, peptidazlar ve glikosiltransferazlar dahil olmak üzere çeşitli enzimler içerir, böylece hücre büyümesi veya oksidatif strese yanıt olarak lizis sırasında esneklik ve mekanik güç sağlar [8 ] . β-1,3-glukan ve β-1,6-glukan, hücre duvarının ana bileşenleridir ve toplam bileşenin sırasıyla %40 ve %20'sini oluşturur. β-1,3-glukan hidrolize edici enzimler, ekzo -1,3-β-glukanazlar gibi iki tipte sınıflandırılır veendo -1,3-β-glukanazlar. endo -1,3-β-Glukanaz, küçük oligosakkaritleri serbest bırakmak için bir glukan zinciri içinde bölünürken, ekzo -1,3-β-glukanaz, tek bir ürün olarak indirgeyici olmayan uçtan glikoz monomerlerini serbest bırakır [ 5 ]. C. albicans'ta , üç ilişkili ekzo -1,3-β-glukanaz, yani Xog1p, Exg2p ve Spr1p, glikozu hücre duvarı glukanlarının uçlarından hidrolitik olarak uzaklaştırır [ 9 , 10 ]. C. albicans Spr1p'nin mekanizması tam olarak anlaşılamamıştır, ancak özellikle Saccharomyces cerevisiae'de sporlanma sırasında eksprese edilmektedir [ 11 ]. Exg2p, C. albicans sırasında mevcutturhücre duvarı rejenerasyonu. Xog1p, C. albicans periplazmik hücre duvarı ile ilişkili başlıca ekzo -1,3-β-glukanazdır . Molekül kütlesi ~45 kDa [ 12 ] olan glikosile edilmemiş bir proteindir . Uzun β-1,3 glukan zincirlerinin bölünmesi, hücre duvarının yumuşamasına neden olur. Bu enzim , konidyumların şişmesi ve çimlenmesi veya hiflerin dallanması sırasında ortaya çıkan Candida'nın hücre duvarı yeniden modellenmesinde yer alır [ 13 ]. Protein, hidrolaz ve transglikosidaz aktiviteleri yoluyla β-D-glukan metabolizması ve morfogenezde yer alır [ 14 ]. Bu enzimin sesamin ile hedeflenmesi, Candida'nın morfogenetik geçişini engelleyebilir.spp. öldürücü olmayan mayadan öldürücü hif formuna [ 14 , 15 ]. Hücre duvarı bileşenlerinin yapısal karmaşıklığı, Candida türlerinin fizyolojisini sürdürmek için gereklidir . Yazarların , farklı konsantrasyonlarda susam yağının misel ve maya formları üzerindeki etkisini belirleyerek yenilebilir susam yağının Candida albicans'a karşı antifungal aktivitesini bildirdiği bir çalışma yapılmıştır [ 15 ].]. Hücre duvarının işlevini ve bütünlüğünü hedeflemek, hücre yapışması gibi enfeksiyon süreçlerinin gelişimini kısıtlamak için umut verici bir yaklaşım olarak kabul edilir. Doğal ürünler, düşük toksisite ve yan etkileri, düşük ilaç direnci, yüksek biyoyararlanım (oral alım) ve daha iyi iyileştirici etkileri nedeniyle ilaçların geliştirilmesi için önemli tıbbi adaylar olarak kabul edilir [16 ] .

        Buna göre, bu çalışmada yenilikçi antifungal bileşikleri belirlemek için fitokimyasalların farklı Candida türlerine karşı taranmasını birleştirdik . Moleküler yerleştirme ve moleküler dinamik (MD) simülasyon tekniklerini kullanarak, sesamin'i ekzo -1,3-β-glukanaz ile potansiyel olarak etkileşime girebilen umut verici bir bileşik olarak tanımladık . Sesamin, bir antikanser, antienflamatuar, antiviral, antioksidan ve antimikrobiyal ajan olarak muazzam bir terapötik potansiyele sahiptir [ 17 , 18 , 19 ]. susam indicumL. (Pedaliaceae) (susam) dünyanın en önemli mahsullerinden biridir. Susam yağı, büyük miktarlarda çoklu doymamış yağ asitleri, proteinler, karbonhidratlar, sesamin, sesamolin, sesamol, tokoferol, fitosteroller, vitaminler ve mineraller içerir [ 20 , 21 ]. Önceki çalışmalar, doğal ürün sesamol'ü farklı Candida türlerine karşı araştırmıştır . kalsinörin sinyal yolu üzerindeki etkisini bildirerek [ 22 ]. Bazı araştırmacılar ayrıca susam yağı kekinden sentezlenen gümüş nanopartiküllerin antikanser ve antimikrobiyal aktivitelerde kullanıldığını bildirmiştir [ 23 ]. Sesamin'in yalnızca C. albicans'a karşı antifungal aktivitesine dair bir rapor vardı.MİK değerinin çok yüksek olduğu bildirilmiş olsa da [ 24 ].

        Bu çalışma, hesaplama tekniklerini ve biyolojik deneyleri birleştirerek, sesamin'in birkaç Candida suşuna karşı bir antifungal ajan olarak bir ön değerlendirmesini sağlamıştır. Tarama iş akışı şurada rapor edilir:Şekil 1.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g001.jpg'dir.

        Şekil 1
        Yeni antifungal ajanları belirlemek için tarama iş akışı.

        Git: 2. Sonuçlar ve Tartışma

        2.1. Hesaplamalı Ayrıntılar


        Uygun ilaç benzeri profillere ( Tablo S1 ) sahip 40 fitokimyasal içeren kitaplığın hazırlanmasından sonra , bileşiklerin ekzo -1,3-p-glukanaz bağlayıcılar gibi davranıp davranmadığını belirlemek için sanal bir ligand taraması gerçekleştirdik . Candida spp.'den ekzo -1,3 - β-glukanaz (Exg) . 438 amino asitlik bir preproenzimi kodlayan EXG geninin ürünüdür [ 25 ]. Olgun protein 400 amino asit içerir ve β-1,3-glukanın indirgeyici olmayan ucundan bir glikoz kalıntısının ve çok daha az ölçüde β-1,6-glukanın hidrolitik olarak uzaklaştırılmasıyla mantarların hücre duvarı β-glukanının metabolizmasında yer alır [ 12]. Glukanlar, genellikle sertlik ve dayanıklılık sağlayan diğer polimerlerle kombinasyon halinde mantar hücre duvarlarının yapısal bileşenleri olarak tanımlanır. Glukanların çeşitli sitoplazmik ve hücre dışı işlevlere sahip olduğuna inanılmaktadır. β-glukanlar muhtemelen, karbon sınırlama koşulları altında kullanılabilen karbon depolama materyalleri olarak işlev görürler ve bu da hayatta kalmada önemli bir role işaret eder [ 26 ]. Glukanazın en yaygın kabul gören biyolojik rolü, morfogenetik olaylar sırasında hücre duvarı glukanının hidrolizi ile sınırlıdır. β-glukanazın C. albicans hücre duvarı ile ilişkili olduğu tarif edilmiştir [ 14 ]. C. albicans'ta , ekzo -1,3 -β-glukanazın, esas olarak germ tüpü oluşumu sırasında salgılandığı ve ihraç edildiği bulundu [27 ]. Ekzo -1,3-β-glukanaz, Candida hücre duvarında bulunan glukanaz aktivitesinin çoğundan sorumludur ; bu nedenle ekzo -1,3-β-glukanaz, Candida enfeksiyonlarına karşı olası bir ilaç hedefi olarak kabul edilebilir . β-glukanazlar, Uluslararası Biyokimya ve Moleküler Biyoloji Birliği (IUBMB) (IUB, 1992) tarafından hidrolize ettikleri β-glukosidik bağların tipine ve spesifik substratlara karşı hidrolitik etkilerine göre sınıflandırılır. Cutfield ve arkadaşları Candida albicans'tan ekzo -1,3-β-glukanazın yapısını doğal ve bağlı formlarda çözmelerine rağmen, bu enzimin incelenmesi için çok az kristalografik veri mevcuttur [ 14]. Enzimin aktif cebi, Arg92 (β2 sarmalından), His135 (β3), Asn191, Glu192 (β4 ve α4 arasında, His253, Tyr255 (β6'nın sonu), Glu292 (β7) ve Trp363 (β8'in sonu) gibi glikosil hidrolaz ailesi 5'in (GH5) aktif bölgesini tanımlayan yüksek düzeyde korunmuş sekiz kalıntıdan oluşur [1 4] Son aktif bölge etiketleme ve mutagenez deneyleri, enzimin katalitik kalıntılarını tanımlamıştır (proton donörleri olarak Glu192 ve nükleofil olarak Glu292) [28] Buna göre, aktif bölge, bir nükleofil ve asit/baz grubu olarak işlev gören )iki glutamat kalıntısı içerir [ 14 ] .-1,3-β-glukanaz enzimi, glukozil hidrolaz ve transglikosilaz aktiviteleri yoluyla hücre duvarı β-glukan yeniden modellenmesinde yer alır. Exg, su dışındaki bir akseptörün glikosil-enzim ara maddesinden [ 12 ] glikozu geri kazanabildiği transferaz aktivitesini temsil eder. Bu aktiviteler, morfogenez sırasında hücre duvarını şekillendirmek için çok önemli olabilir. Bir çift yer değiştirme reaksiyonu, bir glikosil-enzim ara ürününün oluşumunu içerir ve müteakip hidroliz (veya transglikosilasyon), bir oksokarbenyum iyon benzeri geçiş durumları yoluyla ilerler [29 ] . Katalitik alan, (β/α) 8 tarafından desteklenen uzatılmış bir bağlanma yarığı veya oluğu sergiler.varil yapısı. Enzim, katalitik merkezin etrafındaki bu sekiz korunmuş tortunun yanı sıra, β-1,3-glukan zinciriyle etkileşime giren aromatik tortular da içerir [ 29 ]. β-1,3-glukan zincirinin ekzo -1,3-β-glukanaz enziminin cebine girmesi, terminal glikoz kalıntısının -1 konumunda koltuktan bükülmüş tekneye konformasyonunda bir değişikliğe neden olur. Bununla birlikte, cebin geometrisi, β-1,4-glikosidik bağın ayrılması için pek uygun değildir [ 14 ]. Özellikle, iki glikoz bağlama bölgesi tanımlanmıştır. Birincisi Glu27'yi, ikincisi ise Phe144 ve Phe258'i içerir. Mutajenezin sonucu ayrıca, fenilalanin kalıntılarının sağladığı aromatikliğin, k katını değiştirerek sıkıştırmak için çok önemli bir özellik sağladığını gösterir.ve km . Phe144 ve Phe258 kalıntı çiftinin, enzimin hem hidroliz hem de transferaz aktivitesi olan aktif bölgeden hem girişi hem de salınımı kontrol ettiği bulundu. Enzimin boş bir kelepçesi, hidrolize glikozun hızlı difüzyonuna izin verirken, dolu bir kelepçe, alıcının, enzim ara maddesinde bulunan terminal glikozu yakalamasına izin verir. Her iki Phe kalıntısı da tüm mantar ekzo -1,3-β-glukanazları arasında yüksek oranda korunur ve enzimin özgüllüğü ve katalitik etkinliği ile ilişkilidir. Phe-Phe ağ geçidinin mutagenezinden elde edilen sonuçlar, bunun sadece giriş yolunun aromatik doğasını korumakla kalmayıp, aynı zamanda indirgeyici olmayan uçta glikosidik bağ bölünmesi için tam polar olmayan ve daha az hacimli çiftleşme substratı sağladığını göstermektedir [14] ., 29 ]. Bu bilgileri göz önünde bulundurarak, söz konusu kalıntıların enzime güçlü bağlanma ve potansiyel inhibisyonu elde etmek için potansiyel ligandlar tarafından hedeflenmesinin çok önemli olduğunu düşündük. Buna göre görsel inceleme, hidrofobik temaslarda Phe kalıntılarını içeren bu tür olası etkileşim modeli dikkate alınarak gerçekleştirildi. Tablo S1'de bildirilen sanal taramanın sonuçları, ekzo -1,3-β-glukanaz enzimi ile potansiyel olarak etkileşime girebilen en umut verici bileşikleri vurguladı .

        Moleküler yerleştirmenin amacı, bir arama algoritması kullanarak bir ligandın bir proteine ​​potansiyel bağlanma modunu belirlemektir. AutoDock 4.2, en düşük bağlanma enerjilerine dayanan protein-ligand konformasyon çalışmasına yardımcı olan Lamarck Genetik Algoritması (LGA) prensibi üzerinde çalışır [ 30 ]. Moleküler yerleştirme çalışmaları tarafından sağlanan tahminin ardından ve daha önce belirtildiği gibi yerleştirilmiş pozların görsel incelemesinden sonra, Tablo S1'de gösterildiği gibi bileşikleri hesaplama puanına göre sıraladık.. Ligandın seçilen reseptör ile en düşük hesaplama puanı, ligandın dikkate alınan enzim ile tatmin edici bir şekilde etkileşime girebileceğini gösterir. Her fito bileşik, inhibisyon sabiti ve enzimin aktif bölgesi ile kurulabilen hidrojen bağlarının sayısı açısından analiz edildi.tablo 1fito bileşiklerin adını, kimyasal yapıyı, inhibisyon sabitini ve hidrojen bağı oluşumunda yer alan etkileşimli kalıntıların sayısını bildirir. Bağlanma enerjisi ne kadar negatif olursa, bağlanma etkinliği o kadar yüksek olur; böylece dikkate alınan ligand, seçilen ilaç hedefini etkili bir şekilde bağlayabilir. tablo 1


        Dört potansiyel yeni ekzo -1,3-β-glukanaz inhibitörünün yerleştirme sonuçlarının karşılaştırılması .
        Sesamin
        (Lignan)
        -12.21 1.11 His254, Asn146, Gly306
        Pinoresinol
        (Lignan)
        -11.50 3.71 Asp145, Asn146, His254
        Kaflanon
        (Flavonoid)
        -11.48 3.80 Asp145, Tyr255
        Herbaketin
        (Flavonoid)
        -11.03 8.21 Glu27, Glu192, Ser292, Leu304
        Ayrı bir pencerede aç
        Hesaplama sonuçlarına dayanarak, sesamin (tablo 1), hedeflenen enzimin seçilen bağlanma bölgesi içindeki güçlü etkileşimi ve önemli hesaplama puanı nedeniyle en umut verici bileşiklerden biri olarak. Seçilen mantar proteini ile bir hit bileşik olarak sesamin'in çeşitli kenetlenme pozları Tablo S2'de açıklanmaktadır .

        Tablo 2ekzo -1,3-β-glukanazın aktif bölgesi içinde bulunan ana etkileşimlerle birlikte hesaplama parametrelerini gösterir ve en umut verici taranan fitobileşiklerden biri olan sesamin göz önünde bulundurulur. İnhibisyon sabiti, bir enzimin bir bileşik tarafından maksimum yarı yarıya inhibisyonu olarak tanımlanır ve genellikle substrat veya inhibitörün enzimlerin biyolojik aktivitesini artırma/engelleme potansiyelini belirlemek için kullanılır. Sonuçlardan, sesaminin 1.11 nM'lik bir tahmin edilen inhibisyon sabit değerine sahip olduğu bulundu. Özellikle, 100 uM'den düşük bir inhibisyon sabit değerine sahip bileşikler, potansiyel inhibitörler olarak tanımlanırken, 100 uM'den daha yüksek değerler gösteren bileşikler, güçlü olmayan inhibitörler olarak kabul edilir [31 ] . Tablo 2


        Yeni inhibitörün (sesamin) ekzo -1,3-β-glukanaz'a (PDB ID: 4M80) karşı yerleştirme sonuçları.
        sesamin Izgara kutusu merkez koordinatları
        Merkez-x = 4,075
        Merkez-y = 64,791
        Merkez-z = 9,706
        Izgara kutusu Boyut
        x boyutu = 48
        boyut-y = 62
        boyut z = 46
        -12.21 1.11 Phe144, Asp145, Asn146, Glu192, Phe229, Tyr255, Phe258, Gly306
        Ayrı bir pencerede aç
        Daha önce tartışılan ekzo -1,3-β-glukanaz enzim mekanizması göz önüne alındığında ,şekil 2sesamin tarafından enzimin bağlanma bölgesi içinde kurulan olası etkileşimlerin şematik gösterimi. Phe144 ve Phe258 kalıntılarının, Trp363 tarafından tanımlanan cebin tabanından yaklaşık 10 Å yukarıda farklı bir geçit oluşturduğu düşünülürse, bu aromatik geçit, β-1,3-glukan substratının girişini ve serbest glukoz ürününün çıkışını veya alternatif olarak bir akseptöre glukozil transferini kontrol etmek için bir kıskaç görevi görür [29 ] . Ekzo -1,3-β-glukanaz enziminin Phe-Phe kelepçesindeki karbonhidrat-protein etkileşimleri, geçiş durumu etkileşim enerjisinde önemli bir katkı sağlar. Bu şeker bağlama bölgesi, substrat tanıma için çok önemlidir. Yerli exo'da-1,3-β-glukanaz yapısı, fenilalanin halkaları arasındaki boşluk, büyük ölçüde düzensiz bir dizi su molekülü tarafından işgal edilir. Sandalye konformasyonunda 4 Cı'deki şeker parçası, Phe144 ve Phe258 kalıntıları arasında paralel uzanır. Bu cep, sesamin (şekil 2VeFigür 3). Son olarak, +1 alt bölgesinin önemi, kinetik çalışmalardan türetilen bağlanma enerjilerinde yer alan iki fenilalanin kalıntısının bölgeye yönelik mutajenez çalışmaları yoluyla gözlemlendi [29 ] .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g002.jpg'dir.

        şekil 2
        Phe – Phe kelepçesini ve Phe229'u gösteren aktif bölge cebinde sesamin bağlanması. β-1,3-glukan zincirinin karbonhidrat bağlanması bu −1, +1 alt sitesinde ve +2 alt sitesinde meydana gelirken, glikosidik bağ bölünmesi -1 ve +1 alt sitesinde meydana gelir.


        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g003.jpg'dir.

        Figür 3
        Sesaminin ekzo -1,3-β-glukanaz bağlama bölgesi içindeki ana etkileşimleri. ( A ) 3 boyutlu etkileşim modeli. ( B ) ekzo -1,3-p-glukanazın seçilen bağlanma bölgesi içinde sesamin tarafından kurulan ana etkileşimlerin 2B şematik gösterimi .

        Buna göre bileşik, bir ekzo -1,3-p-glukanaz enzim bağlayıcısı gibi davranabilir . Aslında, bildirildiği gibiTablo 2, sesamin, seçilen mantar proteini ile ilgili bir kenetlenme skoru gösterdi. Kısaca sesamin, H bağları ile Phe144, Asn146 ve Gly306 gibi bağlanma bölgesindeki önemli kalıntıları hedefleyebilirken, Phe229 ve Tyr255 ile π-π istifleme oluşturabilen güçlü hidrofobik etkileşimler kurabilirken, Phe258 ile bir π-alkil etkileşimi tespit ettik (Figür 3). Ayrıca, sesamin, gösterildiği gibi π-alkil ve karbon-hidrojen bağları yoluyla Phe-Phe kelepçesi ile etkileşime girebildi.Figür 3. Bununla birlikte sesamin, potansiyel bağlanma enerjisine en büyük katkıyı sağlayan Phe229 kalıntısı ile de etkileşime girebildi (Figür 3B). Buna göre, moleküler kenetlenme çalışmalarından, sesamin'in Phe144:Phe258 kıskacına ve Phe229 kalıntılarına bağlanarak Candida türlerinin ekzo -1,3-β-glukanazının aktif bölgesini hedefleyebildiği, böylece potansiyel olarak β-1,3-glukan zincirinin girişini bloke ettiği ve böylece morfogenetik anahtarlamayı inhibe ettiği gözlemlenmiştir .

        Yerleştirme sonuçlarını doğrulamak ve sesaminin bağlanmasının ekzo -1,3-β-glukanazın konformasyonel dinamikleri üzerindeki etkisini değerlendirmek, kompleksin kararlılığını ve ilgili zaman çizelgesi davranışını belirlemek için, ekzo -1,3 -β-glukanaz/sesamin kompleksi üzerinde 100 ns MD simülasyon çalışması gerçekleştirdik. Elde edilen yörünge, her bir omurga atomu ve ligandı için kök-ortalama-kare sapması (RMSD) değerlendirmesi ve her protein kalıntısının kök-ortalama-kare dalgalanması (RMSF) dahil olmak üzere farklı standart simülasyon parametreleri kullanılarak değerlendirildi. Bu çalışmanın sonuçları şu şekilde gösterilmektedir:Şekil 4A, B. Sonuç analizi, sistemin oldukça kararlı olduğunu gösterdi (Şekil 4A), sesaminin enzime bağlanması üzerine gözlenen yapısal stabilitede önemli bir değişiklik olmadan. İlginç bir şekilde, sesamin, moleküler yerleştirme çalışmalarında bulunan etkileşimleri, bağlanma bölgesi içinde ilgili bir hareket olmadan, etkileşimli konformasyonları koruyarak sürdürdü (Şekil 4A). RMSF değeri, protein atomik Ca koordinatları ile MD çalışması boyunca ortalama konumu arasındaki sapmayı temsil eder. RMSF değeri, spesifik protein omurga amino asitlerinin esnekliğini belirlemek için kullanışlıdır. bildirildiği gibiŞekil 4B, C-terminal bölgesinde bulunan bazı kalıntıların hariç tutulmasıyla enzimde küçük bir dalgalanma saptadık.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g004.jpg'dir.

        Şekil 4
        ( A ) Protein/ligand kompleksi (protein için mavi çizgi ve ligand için kırmızı çizgi) ile ilgili kök ortalama kare sapması (RMSD); ( B ) proteinin tüm kalıntılarının ortalama karekök dalgalanması (RMSF). Resimler, Desmond'da bulunan Simulation Event Analysis tarafından oluşturulmuştur.

        Sesamin'in seçilen bağlanma bölgesi içindeki dinamik davranışını daha iyi tanımlamak için aktif bölge içerisinde ligand tarafından oluşturulan ana temas noktalarını analiz ettik ve MD simülasyonunun zaman çizelgesi analizini bildirdik (Şekil 5, panel A ve B). Asp145 ve Asn146 ile kenetlenme çalışmaları ile bulunan H bağları, sporadik olarak su aracılı olmasına rağmen korunur. Ligand tarafından Tyr29, Phe144, Phe229, Tyr255 ve Phe258 ile kurulan hidrofobik temaslar, birkaç π – π istifleme dahil olmak üzere güçlü hidrofobik ağ temasları sağlayan simülasyon sırasında korunmuştur. Ayrıca, MD simülasyonu sırasında, ligandın Tyr255'in yan zinciri ile yeni bir önemli H bağı kurduğunu ve alınan bağlama modunun stabilize edilmesine katkıda bulunduğunu gözlemledik. Genel olarak, seçilen bağlanma bölgesi içindeki ligandın hesaplama sonucu, sesamin'in seçilen enzimin potansiyel bir ligandı gibi davranabileceğini gösterdi.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g005.jpg'dir.

        Şekil 5
        ( A ) MD simülasyonu boyunca izlenen protein-ligand etkileşimleri. Etkileşimler dört tipte gruplandırılabilir: H bağları (yeşil), hidrofobik (gri), iyonik (macenta) ve su köprüleri (mavi). ( B ) Diyagram, ana etkileşimlerin bir zaman çizelgesi açıklamasını göstermektedir. Daha koyu bir turuncu tonu, bazı kalıntıların ligandla birçok farklı temas kurduğunu gösterir.

        Diğer üst sıradaki bileşikler (pinoresinol, caflanon ve herbacetin) için kısa bir tartışma boyunca hesaplama çıktısı, Ek Malzemeler dosyasında açıklanmıştır . Özellikle, Şekil S1–S3'te ekzo -1,3-β-glukanaz bağlama bölgesi içindeki pinoresinolün in silico değerlendirmesi rapor edilmiştir, Şekil S4–S6'da kaflanon ile ilgili hesaplamalı araştırmanın sonucu gösterilmektedir ve Şekil S7–S9'da herbasetin ile ilgili hesaplamalı çalışmaların sonucu rapor edilmektedir.

        Ayrıca, sesamin ve diğer üst sıradaki bileşiklerin bir ekzo -1,3-β-glukanaz bağlayıcı olarak hareket edebilme olasılığına ilişkin daha fazla kanıt sağlamak için , MD çalışmalarından elde edilen tüm yörüngeyi kullanarak fito bileşiklerin ekzo -1,3-β-glukanaza ΔG bağlanmasını hesapladık . Bu hesaplamanın çıktısı şu şekilde rapor edilir:Tablo 3. Elde edilen verilere dayanarak, sesamin'in tatmin edici bir ΔG bağı göstererek ekzo -1,3-β-glukanaz enzimini hedefleyebileceğini ve hesaplanan ΔG bağına ana katkının ΔG vdw ve ΔG Pack parametreleri tarafından önerildiği gibi hidrofobik etkileşimlerden temsil edildiğini doğruladık . Ek olarak, üst sıradaki bileşikler, bağlanma enerjileri açısından tatmin edici parametreler gösterdi. Tablo 3


        MM-GBSA hesaplamasından tahmin edilen serbest bağlanma enerjileri (ΔG bağı ) ve ekzo -1,3-β-glukanaz ile kompleks halinde en üst sıradaki bileşiklerin enerji bileşenleri .
        sesamin -45.74 -14.29 -1.14 -29,53 -4.91 26.31 -61,67
        Pinoresinol -43,91 -12.11 -1.07 -26.82 -2.11 24.67 -59,31
        kaflanon -35.17 -9.23 -1.04 -27.14 -0,73 19.16 -53,22
        Herbaketin -34,28 -13,48 -3.22 -28,79 -4.31 20.37 -58,87
        Ayrı bir pencerede aç
        a van der Waals etkileşim enerjisinin bağlayıcı serbest enerjiye katkısı; b Coulomb enerjisinin bağlayıcı serbest enerjiye katkısı; c bağlayıcı serbest enerjiye hidrojen bağı katkısı; d lipofilik enerjinin bağlayıcı serbest enerjiye katkısı; e π−π paketleme enerjisinin bağlayıcı serbest enerjiye katkısı; f genelleştirilmiş Born elektrostatik çözme enerjisinin bağlayıcı serbest enerjiye katkısı; g toplam bağlanma serbest enerjisi.

        Sesamin ve diğer bitkisel bileşiklerin çeşitli özellikleri, İsviçre ADME sunucusu kullanılarak analiz edildi (Tablo 4). Bahsedilen araç sayesinde, moleküler ağırlık, ağır atom sayısı, dönebilen bağlar, H-bağı vericisi, H-bağı alıcıları, aromatik ağır atomlar, Csp 3 gibi çeşitli parametrelerfraksiyon, molar kırılma ve toplam polar yüzey alanı (TPSA) belirlendi. Farmakokinetik özellikler, genel ilaç benzerliğini oluşturmak için seçilen bileşikler için belirlendi. İnsanlar tarafından pasif olarak gastrointestinal absorpsiyonun ve kan-beyin bariyerini geçme yeteneğinin incelenmesi, ilaçların gereksinim yerine verilmesi için önemlidir ve SwissADME aracılığıyla hesaplanır. Bileşiklerin metabolizması, P-gp'nin ve CYP450'nin beş ana izoformunun (CYP1A2, CYP2C9, CYP2C19, CYP2D6 ve CYP3A4) rolü dikkate alınarak değerlendirildi. Bu izoformlardan herhangi birinin inhibisyonu, ilacın klirensinde ve metabolizmasında azalmaya bağlı olarak ilaç birikimine yol açacaktır. SwissADME aracı, molekülün CYP450 izoformlarının olası bir inhibitörü ile birlikte bir P-gp substratı olma olasılığının yüksek olup olmadığını gösteren 'evet' veya 'hayır' şeklinde bilgi sağlar. İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( ve Muegge (ilaç benzeri olmayan moleküller için kullanılır). Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( ve Muegge (ilaç benzeri olmayan moleküller için kullanılır). Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler (Tablo 4). Tablo 4


        En üst sıradaki fito bileşiklerin ilaca benzerliği ve ADME profili.
        fizikokimyasal parametre
        Moleküler formül C 20 H 22 O 6 C 21 H 20 O 6 C 15 H 10 O 7 C 20 H 18 O 6 C 13 H 12 F 2 N 6 O
        Dönebilen bağ sayısı 4 4 1 5
        Molar kırılma 94.90 104.20 78.03 90.00 70.71
        Kesir Csp 3 0.40 0.19 0.00 0.40 0.23
        ağır atom sayısı 26 27 22 26 22
        Aromatik ağır atom sayısı 12 16 16 12 16
        TPSA 77,38 Å 2 100,13 Å 2 131,36 Å 2 55,38 Å 2 81.65 Å 2
        lipofiliklik
        Günlük G o/w (iLOGP) 2,67 3.29 1.50 3.46 0,41
        Günlük Güç ( XLOGP3) 2.28 5.03 2.17 2,68 0,35
        Günlük G o/w (WLOGP) 2.54 4.09 1.99 2,57 1.47
        Günlük G o/w (MLOGP) 1.17 1.31 -0,56 1.98 1.47
        Günlük Güç ( SILICOS-IT) 2,66 4.28 1.54 3.25 0,71
        Mutabakat Günlüğü P o/w 2.26 3.60 1.33 2,79 0,88
        Farmakokinetik
        GI emilimi Yüksek Yüksek Yüksek Yüksek Yüksek
        BBB geçirgen Evet HAYIR HAYIR Evet HAYIR
        P-gp substrat Evet HAYIR HAYIR HAYIR Evet
        CYP1A2 inhibitörü HAYIR HAYIR Evet HAYIR HAYIR
        CYP2C19 inhibitörü HAYIR HAYIR HAYIR Evet Evet
        CYP2C9 inhibitörü HAYIR Evet HAYIR HAYIR HAYIR
        CYP2D6 inhibitörü Evet HAYIR Evet Evet HAYIR
        CYP3A4 inhibitörü Evet HAYIR Evet Evet HAYIR
        Günlük K p (cilt geçirgenliği) −6,87 cm/sn −4,98 cm/sn −6,60 cm/sn −6,56 cm/sn −7,92 cm/sn
        Uyuşturucu benzerliği
        Lipinski Evet; 0 ihlal Evet; 0 ihlal Evet; 0 ihlal Evet; 0 ihlal Evet: 0 ihlal
        kaz Evet Evet Evet Evet Evet
        Veber Evet Evet Evet Evet Evet
        Egan Evet Evet Evet Evet Evet
        Müge Evet HAYIR; 1 ihlal: XLOGP3>5 Evet Evet Evet
        biyoyararlanım puanı 0,55 0,55 0,55 0,55 0,55
        Ayrı bir pencerede aç
        Sesamin'in biyoyararlanım radar grafiğiŞekil 6pembe bölgenin oral biyoyararlanım için uygun bir fizikokimyasal alan olduğunu göstermektedir. Uygun fizikokimyasal alanın renkli bölgesi LIPO (lipofilisite) değerini gösterir; Sesamin için XLOGP3 (2,68), SIZE (moleküler ağırlık 354,35 g/mol), POLAR (polarite 55,38), INSOLU (çözünmezlik, -3,93) ve FLEX (esneklik, dönebilen bağ sayısı 6).

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g006.jpg'dir.

        Şekil 6
        Sesamin'in biyoyararlanım radar grafiği; pembe alan oral biyoyararlanım için uygun fizikokimyasal boşluktur LIPO (lipofilisite): -0,7 < XLOGP3 < +5,0, BOYUT: 150 g/mol < MW < 500 g/mol, POLAR (polarite): 20 < TPSA < 130, INSOLU (çözünmezlik): -6 < Log S (ESOL) < 0, INSATU (doymamışlık): 0,25 < Fra Csp 3 < 1, FLEX (esneklik): 0 < Num . dönebilen bağlar < 9. 2.2. Biyolojik Değerlendirme


        2.2.1. Disk Difüzyon Yöntemiyle İlaç Duyarlılık Testi


        İnsan mantar patojeninin sesamine ilaç duyarlılığı disk difüzyon yöntemi kullanılarak belirlendi (Şekil 7). İnhibisyon bölgesinin çapı hesaplandı ve deneyler üç kopya halinde gerçekleştirildi. Candida glabrata için sırasıyla 16 μg/mL ve 32 μg/mL sesamin konsantrasyonunda inhibisyon zonu 5 mm ve 5,2 mm olarak bulundu . Bu sırada flukonazol (10 μg/mL) ile Candida glabrata için 4,8 mm'lik bir inhibisyon zonu gözlemledik .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g007.jpg'dir.

        Şekil 7
        İnsan mantar patojeni Candida glabrata'ya karşı ilaç molekülünün oluşturduğu inhibisyon bölgesi . A, 32 μg/mL sesamin konsantrasyonundaki inhibisyon bölgesini temsil eder, B ve C, 16 μg/mL sesamin konsantrasyonundaki inhibisyon bölgesini temsil eder ve D, pozitif kontrol flukonazol ilacını (10 μg/mL) temsil eder.

        2.2.2. Minimum Engelleyici Konsantrasyon


        Sesamin'in Candida spp.'ye karşı MİK ve MFC değerleri . sırasıyla 16 ve 32 µg/mL bulundu (Tablo 5). Sesamin'in özellikle in vitro antifungal duyarlılığı C. albicans (ATCC 90028), C. parapsilosis (ATCC 22019), C. krusei (ATCC 6258) ve C. glabrata'ya (ATCC 15545) karşı değerlendirildi . Tablo 5


        Sesaminin in vitro antifungal duyarlılığı (değerler μg/mL cinsinden).
        C. albicans (ATCC 90028) 16 32 2 4 1 2
        C. glabrata (ATCC 15545) 16 32 1 2 0,5 2
        C. krusei (ATCC 6258) 16 32 16 32 1 2
        C. parapsilosis (ATCC 22019) 16 32 1 2 0,5 2
        Ayrı bir pencerede aç
        Muamele edilmemiş kontrol hücreleri, sesamin ile muamele edilmiş hücreler ile karşılaştırıldığında normal büyüme gösterdi.

        2.2.3. Nokta Tahlili


        Antifungal duyarlılık, katı besiyerinde spot deneyi ile incelenmiştir (Şekil 8, panel A ve B) doğrulama yöntemlerinden biri olarak. Candida hücreleri YEPD agarda 30 °C'de 48 saat büyütüldü. Yatay yöndeki beş nokta, hücre kültürünün seri seyreltilmesini temsil eder. Sesamin konsantrasyonuna bağlı olan Candida hücrelerinin büyümesinde önemli bir azalma olmuştur .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g008.jpg'dir.

        Şekil 8
        ( A ) C. parapsilosis (ATCC 22019), C. glabrata (ATCC 15545), C. krusei (ATCC 6258), C. albicans (ATCC 90028) hücrelerinin MIC sesamin konsantrasyonu ve negatif kontrol olarak işlenmemiş C. parapsilosis (ATCC 22019) varlığında nokta tahlili profili .

        ( B ) Sesaminin MİK konsantrasyonunun (16 μg/mL'de) ( x ekseni - Candida spp. (dilüsyon) ve y ekseni - koloni sayısı) varlığıyla nokta analizi sonuçlarının grafiksel gösterimi .

        2.2.4. Sinerjik Çalışma

        Sinerjizm, tek başına hareket ettiğinde her ilacın etkilerinin toplamından daha büyük bir etki sergileyen iki veya daha fazla bileşik arasındaki etkileşim olarak tanımlanabilecek ilaç kombinasyonlarına uygulanır. Sinerjistik ilaç kombinasyonu, ilaç etkinliğini artırarak ve ilaç toksisitesini azaltarak tek ilaç kullanımının dozunu azaltır. Ayrıca, ilaç direncinin ortaya çıkmasıyla ilgili sorun, çoklu hedef stratejisi ile azaltılabilir. Şiddetli invaziv fungal enfeksiyonlarla mücadelede iki veya daha fazla antifungal ilacın kullanılması uzun süredir kliniklerde daha iyi bir alternatif olarak kabul edilmektedir. İnvaziv kandidiyazis için sinerjistik tedavinin ilk bildirilen uygulaması flusitozin ve amfoterisin B'dir [ 32]. Mevcut çalışmada, farklı Candida türlerine karşı flukonazol kullanılarak sesamin ile sinerjik deneyler yapılmıştır. Sesamin ile birlikte flukonazolün (Hindistan'da ana pazarlanan antifungal ilaç) hesaplanan FICI değeri 0.5'ten düşüktü, bu da iki ilaç arasında sinerjistik bir etkileşim modu olduğunu düşündürür.Tablo 6). Tablo 6


        Tanımlanan bileşik sesamin ile pazarlanan ilaç flukonazolü dikkate alan sinerjistik çalışma.
        C. albicans (ATCC 90028) 16 2 0,125 0,125 0.07 sinerjik
        C. parapsilosis (ATCC 22019) 16 2 0,125 0,125 0.07 sinerjik
        C. krusei (ATCC 6258) 16 16 0,5 0,125 0.03 sinerjik
        C. glabrata (ATCC 15545) 16 1 0,125 0,125 0.13 sinerjik
        Ayrı bir pencerede aç
        Git: 3. Malzemeler ve Yöntemler

        3.1. Hesaplamalı Ayrıntılar


        3.1.1. Fitokimyasal Kitaplık Hazırlama


        Uygun fitokimyasallar, 'fitokimyasallar' ve 'mantar önleyici aktivite' gibi anahtar kelimeler kullanılarak PubChem, Google Scholar ve ScienceDirect'ten seçildi. Bu arama yöntemini takiben, uygun Lipinski kuralıyla (Tablo S1) fenoller, flavonoidler, tanenler, terpenoidler, alkaloitler, kinonlar, kumarinler ve lignanlar gibi farklı sınıflara ait 40 doğal fito bileşik içeren küçük bir kitaplık oluşturduk (Tablo S1) [ 33 ] .

        3.1.2. Moleküler Yerleştirme


        Mantar proteini ekso -1,3-β-glukanazın (PDB ID 4M80) 3 boyutlu yapısı Protein Veritabanı Bankasından alınmıştır [ 34 ]. Seçilen kütüphanedeki tüm bileşiklerin 3 boyutlu yapıları MGL araçları kullanılarak pdbqt dosyalarına dönüştürüldü. Moleküler yerleştirme, AutoDock Tools-1.5.7 aracılığıyla AutoDock 4.2 yazılımı kullanılarak gerçekleştirildi [ 30]. Kısaca, protein PDB dosyası AutoDock Araçlarında açıldı. Su molekülleri ve herhangi bir bağlı ligand silindi, ardından protein molekülüne Kollmann yükleri eklendi. Izgara parametresi, analiz için aktif protein bölgesini kapsayacak şekilde seçildi. Bu çalışmada ızgara aralığı 0,375 Å (varsayılan) olarak ayarlanmıştır ve merkez ızgara kutusu değerleri sırasıyla x = 4,075, y = 64,791 ve z = 9,706 olarak ayarlanmıştır. x, y ve z boyutları boyunca ızgara noktalarının sayısı 48 × 62 × 46 olarak ayarlandı. Autogrid'in başarıyla tamamlanmasının ardından, Genetik Algoritma (GA) varsayılan olarak şu şekilde ayarlandı: (1) GA çalıştırma sayısı, 50; (2) nüfus büyüklüğü, 100; (3) enerji değerlendirmesi sayısı, 2,5 milyon (2,0 Å kümelenmiş tolerans); ve (4) nesil sayısı, 27000. Bundan sonra, yerleştirme kompleksi, AutoDock Araçlarından pdbqt dosya biçiminde alındı. Ligandlar ve seçilen protein arasındaki etkileşimler, etkileşen protein kalıntılarıyla birlikte kenetlenme skoru (yani bağlanma enerjisi, kcal/mol) ve inhibisyon sabiti (nM) temelinde hesaplandı. Proteinlerin Yüzey Topografisi için Bilgisayarlı Atlas (CASTp) [35 ] ve Biovia Discovery Studio (Discovery Studio, sürüm 4.5, San Diego: Dassault Systèmes, Biovia, 2019), proteinin aktif bölgesinde bulunan amino asitleri belirlemek için kullanıldı.

        3.1.3. Moleküler Dinamik (MD)


        MD simülasyonları, daha önce tarafımızdan [ 36 , 37 ] açıklandığı gibi Desmond 5.6 akademik versiyonu (Desmond Molecular Dynamics System, versiyon 5.6, DE Shaw Research, New York, NY, 2018. Maestro-Desmond Interoperability Tools, Schrödinger, New York, NY, ABD, 2018) kullanılarak yapıldı . Moleküler yerleştirme araştırmasından elde edilen kompleks, Desmond sistem oluşturucu kullanılarak suyla dolu ortorombik bir kutuya (TIP3P modeli) çözüldü. MD simülasyonu, tek değerlikli iyonlar (Na + ve Cl -) kullanılarak OPLS'yi kuvvet alanı olarak benimseyerek gerçekleştirildi., 0,15 M'lik fizyolojik konsantrasyon, sabit sıcaklıkta (310 K) ve basınçta (1,01325 bar), topluluk sınıfı NPT (sabit sayıda parçacık, basınç ve sıcaklık) ile. Hareket denklemlerini entegre etmek için bir RESPA entegratörü uygulandı (2.0 fs'lik iç zaman adımı). Sabit bir simülasyon sıcaklığını korumak için Nose-Hoover termostatları kullanıldı ve basıncı kontrol etmek için Martyna-Tobias-Klein yöntemi uygulandı. Uzun menzilli elektrostatik etkileşimler, van der Waals ve kısa menzilli elektrostatik etkileşimler için 9.0 Å ile parçacık ağlı Ewald yöntemi (PME) ile hesaplandı. Sistemin dengelenmesi, Desmond'da sağlanan varsayılan protokol kullanılarak gerçekleştirildi. Sonuç olarak, 100 ns'lik bir bireysel yörünge hesaplandı. Daha güvenilir çıktı sağlamak için MD simülasyon deneyleri iki kez tekrarlandı. Yörünge dosyaları, bu çalışmada sunulan MD simülasyon deneyine ilişkin tüm çizimleri oluşturmak için de kullanılan Desmond paketinde uygulanan Simulation Event tarafından analiz edildi. Ayrıca, bağlanma enerjisini hesapladık (ΔGDesmond'da bulunan termal MM-GBSA komut dosyasını ( thermal_mmgbsa.py ) kullanarak Desmond tarafından elde edilen yörüngeden hedef protein içindeki sesaminin bağlanması ). Bu araç, Desmond MD yörüngesini kullanır, onu ayrı çerçeve anlık görüntülerine böler ve her birini MM-GBSA analizi yoluyla yürütür. MM-GBSA hesaplaması sırasında, ortalama bağlanma serbest enerjisini hesaplamak için girdi olarak 100 ns MD simülasyonundan 1000 anlık görüntü kullanıldı. Değerlendirilen ΔG bağı, hesaplamada kullanılan enerji bileşenleriyle birlikte Bölüm 2'de ortalama değer olarak rapor edilir .

        3.1.4. ADMET/Farmakokinetik Öngörüleri ve Biyoaktif Değerlendirme


        En umut verici fito bileşik sesamin'in ADMET özellikleri, İsviçre ADME aracı [ 38 ] kullanılarak değerlendirildi . Ligandın enzim veya protein ile etkileşimi, etkili bir ilaç olmasını sağlayamaz. İlaca benzerlik çalışmaları, bir molekülün biyoyararlanımı açısından oral bir ilaç gibi davranma olasılığını ölçmemize yardımcı olur. Çeşitli özelliklerin bilgisi, ilaç tasarımı süreci için esastır ve kabul edilemez ADMET özelliklerinin varlığı, ilacın klinik deneylerde başarısız olmasına yol açar. ADMET, fito bileşiğin ilaca benzer doğasının doğru özelliklerini verir ve kan-beyin bariyeri geçirgenliği, gastrointestinal absorpsiyon gibi parametrelerin sayısal değerlerini sağlar ve Ames testi, fare karsinojenitesi ve h gibi toksisite testleri hakkında bilgi sağlar .ERG inhibisyonu. 3.2. Bir Antifungal Ajan Olarak Sesamin'in Biyolojik Değerlendirmesi


        3.2.1. Büyüme Ortamı ve Kullanılan Suşlar


        Bu çalışmada kullanılan Candida suşları C. krusei (ATCC 6258), C. albicans (ATCC 90028), C. parapsilosis (ATCC 22019) ve C. glabrata (ATCC 15545) idi. Tüm Candida suşları -80 °C'de %30 ( v / v ) gliserol stokunda saklandı . Hücreler, Sabouraud dekstroz agar (SDA) plakasında taze olarak canlandırıldı ve YEPD suyuna aktarıldı. Hücreler, suşların canlanmasını sağlamak için her çalışmadan önce agar plakasında 30 °C'de büyütüldü. Tüm Candida suşları, %1 maya ekstraktı ( ağırlık / hacim ), pepton %2 ( ağırlık) bileşimi ile YEPD suyu içinde kültürlendi./ v ) ve dekstroz %2 ( w / v ). Agar plakaları için, ortama %2 ( w / v ) agar (HiMedia, Mumbai, Hindistan) eklendi. Sesamin ticari olarak Combi Blocks'tan (Saflık %98) satın alınmıştır.

        3.2.2. Aşı Hazırlama


        Süspansiyonlar, taze Candida kültürlerinden hazırlandı, agar plakalarına kaplandı ve 35 °C'de 24-48 saat inkübe edildi. İnkübasyondan sonra, kabaca 4-5 maya kolonisini (steril öze ile) 3 mL %0,85 salin solüsyonu içeren bir test tüpüne aktardık. Ortaya çıkan süspansiyonlar 15 saniye vortekslendi. Elde edilen son konsantrasyon 1-5 x 10⁶ koloni idi .

        3.2.3. Disk Difüzyon Deneyi


        Disk difüzyon testi tarif edildiği gibi yapıldı [ 39 ]. İlaçlar, istenen konsantrasyonda 10 uL'lik bir hacimde lekelendi ve ilgili inhibisyon bölgelerinin çapları, plakaların 30 °C'de 48 saat inkübasyonundan sonra ölçüldü.

        3.2.4. Nokta Tahlili


        Nokta tahlili için, her bir maya kültürünün (her biri 0.1'lik bir OD 600 nm'ye kadar normal salin içinde süspanse edilmiş hücrelere sahip) beş katlı seri dilüsyonlarının 5 uL'si, ilaçların yokluğunda (kontrol) ve varlığında YEPD plakalarına lekelendi. Büyüme farkı, 30 °C'de 48 saat inkübasyondan sonra ölçüldü [ 40 ].

        3.2.5. Minimum İnhibitör Konsantrasyon (MIC) ve Minimum Fungisidal Konsantrasyon (MFC) Tayini


        MIC, daha önce NCCLS [ 41 ] olan Clinical and Laboratory Standards Institute (CLSI)'nin M27-S4 yönteminde tarif edildiği gibi sıvı besiyeri seyreltme yöntemiyle belirlendi . Kısaca, ilacın geri kalan ortamla birlikte eklenmesinin ardından 96 oyuklu plakanın her bir oyuğuna 100 uL ortam yerleştirildi ve ardından seri olarak seyreltildi. Toplam 100 µL hücre süspansiyonu (normal salin içinde OD 600'e kadar)0.1) plakanın her bir oyuğuna eklendi. Paralel olarak, maya canlılığı ve flukonazol ve amfoterisin B'ye duyarlılık için kontroller oluşturuldu. Plakalar, 24-48 saat 35 °C'de inkübe edildi. Kuluçka süresinden sonra, üremenin varlığı veya yokluğu görsel olarak gözlendi. MIC, maya büyümesinin gözle görülür bir şekilde engellenmesini sağlayan en düşük konsantrasyon olarak tanımlandı. MFC, maya büyümesini tamamen engelleyen veya üçten az koloni oluşturan birimin (CFU) oluşmasına neden olarak mantar öldürücü aktiviteye neden olan test bileşiğinin en düşük konsantrasyonu olarak tanımlandı.

        3.2.6. Sinerjik Çalışma/Dama Tahtası Mikrodilüsyon Testi


        Standart bir antifungal ilaç olan flukonazol ile kombinasyon halinde sesamin'in antifungal aktivitesi, sinerjistik bir çalışma ile değerlendirildi. Bir mikrotitre plakasına toplam 50 uL sesamin (64 ila 0.5 ug/mL) ve 50 uL flukonazol (64 ila 0.125 ug/mL) ilave edildi. Her oyuk, 200 uL'lik bir nihai hacim oluşturmak için 100 uL mantar süspansiyonu ile aşılandı. Elde edilen dama tahtası plakaları, gece boyunca 37 °C'de inkübe edildi. Fraksiyonel inhibitör konsantrasyon indeksi (FICI), aşağıdaki denklem [ 42 ] kullanılarak hesaplandı :
        FIC Endeksi =Kombinasyon halinde Sesamin MİK'si _ Tek başına Sesamin'in MIC'si +Kombinasyon halinde Flukonazol MİK'si _ Tek başına Flukonazol MİK'si


        "Sinerji ve düşmanlık" sırasıyla FICI ≤ 0.5 ve > 4 ile tanımlandı. Bu arada, 'kısmi sinerjistik', 0,5 < FICI < 1 ile tanımlanırken, 'kayıtsızlık', 1 < FICI ≤ 4 ile tanımlandı.

        Git: 4. Sonuçlar


        Mantar hücre duvarı esas olarak adezyon için gerekli kitin, glukanlar, mannanlar ve glikoproteinlerden oluşur. Aynı zamanda koruyucu bir bariyer görevi görür. Hücre duvarı bileşenlerini ve enzimlerini hedeflemek, yeni antifungal ajanlar geliştirmek için çekici ilaç hedefleri olabilir. Bu çalışmada, yeni antifungal ajanları tanımlamak için in silico yöntemlere ve kapsamlı biyolojik değerlendirmeye dayalı entegre bir tarama platformu geliştirdik. Candida spp.'de bulunan ekzo -1,3-β-glukanaz enzimini hedefleyerek antifungal ajanlar olarak hareket edebilen doğal ürünleri seçmek için bu platformu kullandık . ekzo _-1,3-β-glukanaz enzimi, hidrolaz ve transglikosidaz aktiviteleri yoluyla β-D-glukan metabolizmasında ve nihai mantar morfogenezinde yer alır. Maya hipha morfolojik geçişi, konakçı dokuların mantar patogenezinde yer alan oldukça öldürücü bir özellik olarak tanımlanır. Moleküler yerleştirme, MD ve bileşiklerin ilaç benzeri profillerinin değerlendirilmesine dayalı hesaplama protokolümüzün ardından, sesamini olası bir antifungal profil ile donatılmış potansiyel bir ekzo -1,3-β-glukanaz bağlayıcı olarak tanımladık. Sesamin'in farklı Candida'ya karşı etkinliğini değerlendirmek için bir dizi in vitro test gerçekleştirerek in silico bulguları daha da doğruladık.türler. Sesamin, 16 μg/mL MİK değeri ile ilginç bir antifungal profil gösterdi. Agbo ve ark. Candida albicans'a (256 μg/mL) karşı çok daha yüksek bir sesamin MİK değeri belirlemiştir [ 24 ], bu da mevcut çalışmayı son derece alakalı kılmaktadır. Sesaminin referans ilaç flukonazol ile sinerjistik çalışmalarını da gerçekleştirdik ve ilginç sonuçlar elde ettik. Buna göre, mevcut çalışma, düşük toksisitesi, kolay bulunabilirliği ve önemli antifungal aktivitesi nedeniyle mantar enfeksiyonlarına karşı yeni terapötik ajanlar geliştirmek için ilginç bir iskele olarak doğal ürün sesamin'i vurgulamaktadır.

        Git: teşekkürler


        Yazarlar sürekli destek ve teşvikleri için Müdür, Ramjas Koleji ve Delhi Üniversitesi Hindu Koleji'ne şükranlarını sunarlar. KW ayrıca Genç Araştırma Bursları (JRF) şeklinde mali destek için Üniversite Hibe Komisyonu'na (UGC) teşekkür etmek ister. Yazarlar, deneylerin gerçekleştirilmesindeki değerli yardımları için Rijul Tandon'a teşekkür eder.

        Git: Tamamlayıcı Malzemeler


        Aşağıdaki destekleyici bilgiler şu adresten indirilebilir: https://www.mdpi.com/article/10.3390...les28124658/s1 , Şekiller S1–S9, en üst sıradaki bileşik (pinoresinol, kaflanon ve herbasetin) için hesaplama çıktısını açıklamaktadır; Tablolar S1 ve S2 yanaşma sonuçları.
        Ek veri dosyası için buraya tıklayın. (2,2M, zip)
        Git: Finansman Tablosu


        Bu araştırma herhangi bir dış finansman almamıştır.

        Git: Yazar Katkıları


        Kavramsallaştırma, NK ve SB; metodoloji, KW, HK, NK ve SB; yazılım, NK ve SB; doğrulama, KW, HK, NK ve SB; resmi analiz, KW, HK, NK ve SB; soruşturma, KW, HK, NK ve SB; veri iyileştirme, KW, HK, NK ve SB; yazma—orijinal taslak hazırlama, KW, NK ve SB; yazma—inceleme ve düzenleme, KW, HK, NK ve SB; süpervizyon, HK, NK ve SB Tüm yazarlar makalenin yayınlanan versiyonunu okumuş ve kabul etmiştir.

        Git: Kurumsal İnceleme Kurulu Beyanı


        Uygulanamaz.

        Git: Bilgilendirilmiş Onam Beyanı


        Uygulanamaz.

        Git: Veri Kullanılabilirliği Bildirimi


        Uygulanamaz.

        Git: Çıkar çatışmaları


        Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

        Git: Örnek Durumu


        Uygulanamaz.

        Git: Dipnotlar


        Sorumluluk Reddi/Yayıncının Notu: Tüm yayınlarda yer alan ifadeler, görüşler ve veriler yalnızca bireysel yazar(lar)a ve katkıda bulunan(lar)a aittir ve MDPI ve/veya editör(ler)e ait değildir. MDPI ve/veya editör(ler), içerikte atıfta bulunulan herhangi bir fikir, yöntem, talimat veya üründen kaynaklanan kişi veya mülk yaralanmalarından sorumluluk kabul etmez.


        Git: Referanslar

        1. Talapko J., Juzbasic M., Matijevic T., Pustijanac E., Bekic S., Kotris I., Skrlec I. Candida albicans—The Virulans Factors and Clinical Manifestations of Infection. J. Mantarlar. 2021; 7:79 . doi: 10.3390/jof7020079. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        2. Whaley SG, Berkow EL, Rybak JM, Nishimoto AT, Barker KS, Rogers PD Candida albicans ve Emerging Non-albicans Candida Türlerinde Azol Antifungal Direnç. Ön. Mikrobiyoloji. 2017; 7 :2173. doi: 10.3389/fmicb.2016.02173. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        3. Prasad R., Kapoor K. Candida mayasında çoklu ilaç direnci. Int. Cytol. 2005; 242 :215–248. doi: 10.1016/S0074-7696(04)42005-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        4. Nakatani Y., Larsen DS, Cutfield SM, Cutfield JF Candida albicans'tan elde edilen ekzo -1,3-beta-glukanazın bir glikosenteze dönüştürülmesinin ardından bölgesel özgüllükte büyük değişiklik . Biyokimya. 2014; 53 :3318–3326. doi: 10.1021/bi500239m. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        5. Mouyna I., Hartl L., Latge JP Aspergillus fumigatus'ta β-1,3-glukan değiştirici enzimler. Ön. Mikrobiyoloji. 2013; 4 :81. doi: 10.3389/fmicb.2013.00081. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        6. Latge JP Hücre duvarı: Mantar hücresi için bir karbonhidrat zırhı. Mol. Mikrobiyoloji. 2007; 66 :279–290. doi: 10.1111/j.1365-2958.2007.05872.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        7. Brown JA, Catley BJ Candida albicans'ta polisakarit sentezinin izlenmesi. Karbonhidrat. Res. 1992; 227 :195–202. doi: 10.1016/0008-6215(92)85071-7. [ CrossRef ] [ Google Akademik ]
        8. Rast DM, Baumgartner D., Mayer C., Hollenstein GO Mantarlarda hücre duvarı ile ilişkili enzimler. fitokimya. 2003; 64 :339–366. doi: 10.1016/S0031-9422(03)00350-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        9. Adams DJ Fungal hücre duvarı kitinazları ve glukanazlar. Mikrobiyoloji. 2004; 150 :2029–2035. doi: 10.1099/mic.0.26980-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        10. Larriba G., Andaluz E., Cueva R., Basco RD Maya eksoglukanazlarının moleküler biyolojisi. FEMS Mikrobiyoloji. Letonya 1995; 125 :121–126. doi: 10.1111/j.1574-6968.1995.tb07347.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        11. San Segundo P., Correa J., Vazquez de Aldana CR, del Rey F. SSG1, Saccharomyces cerevisiae'de bir sporülasyona özgü 1,3-beta-glukanazı kodlayan bir gen. J. Bacteriol. 1993; 175 :3823–3837. doi: 10.1128/jb.175.12.3823-3837.1993. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        12. Stubbs HJ, Brasch DJ, Emerson GW, Sullivan PA Candida albicans'ın beta-1,3-ekzoglukanazının hidrolaz ve transferaz aktiviteleri. Avro. J. Biochem. 1999; 263 :889–895. doi: 10.1046/j.1432-1327.1999.00581.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        13. Xu H., Nobile CJ, Dongari-Bagtzoglou A. Glucanase, mantar patojeni Candida albicans'ın filamentleşmesini indükler. PLoS BİR. 2013; 8 :e63736. doi: 10.1371/journal.pone.0063736. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        14. Cutfield SM, Davies GJ, Murshudov G., Anderson BF, Moody PC, Sullivan PA, Cutfield JF Candida albicans'tan ekzo -beta-(1,3)-glukanazın doğal ve bağlı formlardaki yapısı : 5 glikosil hidrolaz ailesindeki bir cep ve oluk arasındaki ilişki. J. Mol. Biol. 1999; 294 :771–783. doi: 10.1006/jmbi.1999.3287. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        15. Ogawa T., Nishio J., Okada S. Yenilebilir susam yağının Candida albicans'ın klinik izolatlarının büyümesi üzerindeki etkisi. Biol. Res. hemşireler. 2014; 16 :335–343. doi: 10.1177/1099800413501539. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        16. Nasim N., Sandeep IS, Mohanty S. İlaç keşfi için bitki kaynaklı doğal ürünler: Mevcut yaklaşımlar ve beklentiler. çekirdek. 2022; 65 :399–411. doi: 10.1007/s13237-022-00405-3. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        17. Harikumar KB, Sung B., Tharakan ST, Pandey MK, Joy B., Guha S., Krishnan S., Aggarwal BB Sesamin, NF-kappa B ile düzenlenen hücre sağkalımını, proliferasyonunu, istilasını ve anjiyojenik gen ürünlerini baskılayarak kemopreventif etkiler gösterir. Mol. Kanser Arş. 2010; 8 :751–761. doi: 10.1158/1541-7786.MCR-09-0565. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        18. Kumar A., ​​Mishra DC, Angadi UB, Yadav R., Rai A., Kumar D. Susamdan Türetilmiş Fitokimyasalların SARS-CoV-2 Ana Proteazına Karşı İnhibisyon Potansiyelleri: Bir Moleküler Yerleştirme ve Simülasyon Çalışması. Ön. kimya 2021; 9 :744376. doi: 10.3389/fchem.2021.744376. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        19. Mahendra Kumar C., Singh SA Susamdan elde edilen biyoaktif lignanlar ( Sesamum indicum L.): Gıda uygulamaları için antioksidan ve antibakteriyel etkilerinin değerlendirilmesi. J. Gıda Bilimi Teknoloji 2015; 52 :2934–2941. doi: 10.1007/s13197-014-1334-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        20. Andargie M., Vinas M., Rathgeb A., Moller E., Karlovsky P. Lignans of Susam ( Sesamum indicum L.): Kapsamlı Bir İnceleme. moleküller. 2021; 26 :883. doi: 10.3390/moleküller26040883. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        21. Michailidis D., Angelis A., Aligiannis N., Mitakou S., Skaltsounis L. Katı Desteksiz Sıvı-Sıvı Ekstraksiyonu ve Kromatografi Teknikleri Kullanılarak Susam Yağından Sesamin, Sesamolin ve Minör Lignanların Geri Kazanımı ve Bunların Enzimatik İnhibisyon Özelliklerinin Değerlendirilmesi. Ön. Eczane. 2019; 10 :723. doi: 10.3389/fphar.2019.00723. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        22. Ansari MA, Fatima Z., Hameed S. Sesamol: Gelecek vadeden antikandidal potansiyele sahip doğal bir fenolik bileşik. J. Pathog. 2014; 2014 :895193. doi: 10.1155/2014/895193. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        23. Alfuraydi AA, Devanesan S., Al-Ansari M., AlSalhi MS, Ranjitsingh AJ Susam yağı küspesinden gümüş nanopartiküllerin çevre dostu yeşil sentezi ve potansiyel antikanser ve antimikrobiyal aktiviteleri. J. Fotokim. Fotobiyol. B.2019 ; 192 :83–89. doi: 10.1016/j.jphotobiol.2019.01.011. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        24. Agbo J., Mpetga JDS, Bikanga R., Tchuenguem RT, Tsafack RBN, Awouafack MD, Dzoyem JP, Ito T., Morita H., Tane P. Caloncoba glauca'dan Yeni Bir Benzophenanthridine Alkaloid. Nat. Üretim komün. 2017; 12 :367–368. [ PubMed ] [ Google Akademik ]
        25. Chambers RS, Broughton MJ, Cannon RD, Carne A., Emerson GW, Sullivan PA Candida albicans'ın bir ekzo -beta-(1,3)-glukanazı: Enzimin saflaştırılması ve genin moleküler klonlanması. J. Gen. Microbiol. 1993; 139 :325–334. doi: 10.1099/00221287-139-2-325. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        26. Pitson SM, Seviour RJ, McDougall BM Selülolitik olmayan fungal beta-glukanazlar: Fizyolojileri ve düzenlemeleri. enzim. Mikrob. Teknoloji 1993; 15 :178–192. doi: 10.1016/0141-0229(93)90136-P. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        27. Chaffin WL, Lopez-Ribot JL, Casanova M., Gozalbo D., Martinez JP Candida albicans'ın hücre duvarı ve salgılanan proteinleri: Tanımlama, işlev ve ifade. Mikrobiyoloji. Mol. Biol. Rev. 1998; 62 :130–180. doi: 10.1128/MMBR.62.1.130-180.1998. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        28. Chambers RS, Walden AR, Brooke GS, Cutfield JF, Sullivan PA Candida albicans'ın ekzo -beta-(1,3) -glukanazında varsayılan bir aktif bölge tortusunun tanımlanması . FEBS Letonya 1993; 327 :366–369. doi: 10.1016/0014-5793(93)81022-R. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        29. Patrick WM, Nakatani Y., Cutfield SM, Sharpe ML, Ramsay RJ, Cutfield JF Candida albicans exo -beta-1,3- glucanase'de karbonhidrat bağlanma bölgeleri ve aktif bölge girişinde Phe-Phe "kelepçesinin" rolü. FEBS J.2010 ; 277 :4549–4561. doi: 10.1111/j.1742-4658.2010.07869.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        30. Morris GM, Huey R., Lindstrom W., Sanner MF, Belew RK, Goodsell DS, Olson AJ AutoDock4 ve AutoDockTools4: Seçici reseptör esnekliği ile otomatik yerleştirme. J. Bilgisayar. kimya 2009; 30 :2785–2791. doi: 10.1002/jcc.21256. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        31. Zheng X., Polli J. Çözünen taşıyıcı taşıyıcılara karşı inhibisyon Ki değerlerini verimli bir şekilde taramak ve ölçmek için inhibitör konsantrasyonlarının tanımlanması. Avro. J. Ecz. bilim 2010; 41 :43–52. doi: 10.1016/j.ejps.2010.05.013. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        32. Hatipoğlu N., Hatipoğlu H. Çocuklarda ve yetişkinlerde invaziv mantar enfeksiyonları için kombinasyon antifungal tedavi. Uzman Rev. Bulaştır. 2013; 11 :523–535. doi: 10.1586/eri.13.29. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        33. Lipinski CA, Lombardo F., Dominy BW, Feeney PJ İlaç keşfi ve geliştirme ortamlarında çözünürlüğü ve geçirgenliği tahmin etmeye yönelik deneysel ve hesaplamalı yaklaşımlar. Av. Uyuşturucu Dağıtımı Rev. 2001; 46 :3–26. doi: 10.1016/S0169-409X(00)00129-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        34. Berman HM, Westbrook J., Feng Z., Gilliland G., Bhat TN, Weissig H., Shindyalov IN, Bourne PE The Protein Data Bank. Nükleik Asitler Res. 2000; 28 :235–242. doi: 10.1093/nar/28.1.235. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        35. Tian W., Chen C., Lei X., Zhao J., Liang J. CASTp 3.0: Proteinlerin yüzey topografisinin bilgisayarlı atlası. Nükleik Asitler Res. 2018; 46 :W363–W367. doi: 10.1093/nar/gky473. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        36. Kapoor N., Ghorai SM, Khuswaha PK, Bandichhor R., Brogi S. SARS-CoV-2 girişine müdahale etmek için insan ACE2 reseptörünün potansiyel bir bağlayıcısı olarak Butein: Bilgisayar destekli bir analiz. J. Mol. modeli. 2022; 28 :270. doi: 10.1007/s00894-022-05270-0. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        37. Sirous H., Chemi G., Campiani G., Brogi S. p53-MDM2 etkileşiminin gelecek vaat eden bozucularını belirlemek için entegre bir in silico tarama stratejisi. bilgisayar. Biol. kimya 2019; 83 :107105. doi: 10.1016/j.compbiolchem.2019.107105. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        38. Daina A., Michielin O., Zoete V. SwissADME: Küçük moleküllerin farmakokinetiğini, ilaca benzerliğini ve tıbbi kimya dostluğunu değerlendirmek için ücretsiz bir web aracı. bilim 2017 ; 7 :42717. doi: 10.1038/srep42717. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        39. Hudzicki J. Kirby-Bauer Disk Difüzyon Duyarlılık Testi Protokolü. Amerikan Mikrobiyoloji Derneği; Washington, DC, ABD: 2009. [(15 Ocak 2023'te erişildi)]. Çevrimiçi olarak erişilebilir: https://www.asm.org/Protocols/Kirby-Bauer-Disk-Diffusion-Susceptibility-Test-Pro [ Google Scholar ]
        40. Prasad T., Chandra A., Mukhopadhyay CK, Prasad R. Candida spp.'nin demir ve ilaç direnci arasındaki beklenmeyen bağlantı : Demir tükenmesi, zar akışkanlığını ve ilaç difüzyonunu artırarak ilaca duyarlı hücrelere yol açar. Antimikrob. Ajan Chemother. 2006; 50 :3597–3606. doi: 10.1128/AAC.00653-06. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        41. Mayaların Broth Dilution Antifungal Duyarlılık Testi için CLSI (Klinik ve Laboratuvar Standartları Enstitüsü) Referans Yöntemi. Klinik ve Laboratuvar Standart Enstitüsü; Wayne, PA, ABD: 2012. Dördüncü Bilgi Eki M27-S4.Wayne. [ Google Akademik ]
        42. Marques MB, Brookings ES, Moser SA, Sonke PB, Waites KB Acinetobacter baumannii nozokomiyal izolatlarının karşılaştırmalı in vitro antimikrobiyal duyarlılıkları ve dokuz antimikrobiyal kombinasyonun sinerjistik aktiviteleri. Antimikrob. Ajan Chemother. 1997; 41 :881–885. doi: 10.1128/AAC.41.5.881. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

        Yorum yap


        • #5
          Seçilmiş 10 Hint bitkisinin anti-kandidal aktivitesinin incelenmesi ve Lawsonia inermis ekstraktının Candida albicans'ta mikrop tüpü oluşumu, proteaz, fosfolipaz ve aspartat dehidrogenaz enzim aktivitesi üzerindeki etkisinin araştırılması

          Sripathy Ravichandranve Sundararaman Muthuraman
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          Deniz Biyoteknolojisi Bölümü, Bharathidasan Üniversitesi, Tiruchirappalli, Tamil Nadu, Hindistan
          Yazışma: Dr. Sundararaman Muthuraman, E-posta: ni.ca.udb@radnus
          Git: Soyut

          Amaç:
          Çalışmanın amacı, doğal kaynaklardan potansiyel anti-kandidal ajanları belirlemek ve Lawsonia inermis ekstraktının Candida albicans'ın başlıca öldürücü faktörleri üzerindeki etkisini aydınlatmaktır .

          Malzemeler ve yöntemler:
          Çeşitli biyoaktif maddelerin en bol bulunan ve kolayca bulunabilen kaynağı olan bitkiler, anti-kandidal tarama çalışması için seçilmiştir. Bu çalışma için antimikrobiyal aktiviteye sahip olduğu kanıtlanmış ancak anti-kandidal aktivite için fazla araştırılmamış on farklı bitki seçildi. Bu bitki yapraklarının etil asetat özü, anti-kandidal aktivite açısından test edildi. İyi anti-kandidal aktiviteye sahip ekstraktlar, C. albicans germ tüpü oluşumu ve enzim (proteaz, fosfolipaz ve aspartat dehidrogenaz) aktivitesindeki etkisi açısından ayrıca tarandı .

          Sonuçlar:
          Taranan 10 bitki arasında, L. inermis ekstresi, C. albicans'ın tamamen inhibisyonunu gösterdi . Daha fazla değerlendirmede, bu ekstrakt serumda C. albicans mikrop tüpü oluşumunu inkübasyon süresinin sonuna kadar (3 saat) tamamen inhibe etti. Bu ekstrakt aynı zamanda C. albicans'ın iki ana öldürücü enzimi olan proteazlara (%27-33) ve fosfolipazlara (%44.5) karşı doza bağımlı inhibitör aktivite sergilemiştir. Ek olarak, bu ekstrakt konstitütif kandidal enzim aspartat dehidrojenazın her iki izoformunu da tamamen inhibe ederek amino asit biyosentezini etkiler.

          Çözüm:
          Bu nedenle, bu çalışma L. inermis'in anti-kandidal potansiyelini doğrulamaktadır ve bu nedenle anti-kandidal ilacın geliştirilmesi için daha fazla düşünülebilir.

          ANAHTAR KELİMELER: Anti-kandidal aktivite, Candida albicans , enzim inhibisyonu, germ tüpü inhibisyonu, Lawsonia inermis
          Git: giriiş


          Fırsatçı mantar enfeksiyonları arasında, özellikle kandidiyaz, invaziv kandidiyaz, küresel olarak yüksek morbidite ve mortalite oranlarına yol açan mantar enfeksiyonlarının en yaygın nedenini oluşturur. Kandidiyazis, toplam sistemik nozokomiyal enfeksiyonun %8-10'unu oluşturur. Oral kandidiyaz, HIV ile enfekte hastalarda görülen en yaygın fırsatçı enfeksiyondur. İnvaziv kandidiyazis, 100.000 popülasyonda 0.4 ölümle 1997'den beri önde gelen ölüm nedeni olmaya devam ediyor.[ 1 ] Etken ajan Candida spp. vajina, deri, oral kavite ve gastrointestinal kanalda kommensal olarak oluşur. Candida'nın dimorfizmive değişen ortamı (özellikle bağışıklığı baskılanmış durumda) hızlı bir şekilde algılayarak ve uyum sağlayarak patojenik forma nüks etme yeteneği, bu fırsatçı mantar patojeninin benzersiz özelliklerinden biridir. Bu adaptasyon fazı sırasında, hiphal spesifik genlerin ve ayrıca adezinler, proteazlar, fosfolipazlar ve metiltransferazlar gibi hayati virülans faktörlerini kodlayan genlerin ekspresyonuna yol açan bir dizi reaksiyon başlatıldı. Bu enzimler, Candida türlerinin hayatta kalmasında ve virülansında hayati bir rol oynamaktadır.[ 2 ] Candida'da azoller, polienler ve ekinokandinler gibi halihazırda mevcut ilaçlara karşı yüksek derecede direnç gözlenmiştir.spp. ve dayanıklılık derecesi türden türe değişir. İlaç direncindeki artış, yeni türlerin ortaya çıkması ve kesilen ilaçların toksisitesi, kandidiyazis ile mücadele için yeni ilaçların geliştirilmesi ihtiyacını doğuran başlıca faktörlerdir.

          Doğal kaynaklar, çeşitli biyoaktif bileşikler açısından zengindir. Bu tür fitokimyasalların terapötik uygulamaları, Hint geleneksel tedavi sistemlerinde binlerce yıldır uygulanmaktadır. Göze çarpan yapısal varyasyonların bol mevcudiyeti, güçlü biyoaktivite ve fitokimyasalların nispeten daha az veya hiç toksisitesi olmaması, ilaç geliştirme için sentetik bileşikler yerine bu doğal kaynaklı bileşiklerin tercih edilmesinin ana nedenleridir. Piyasadaki onaylı ilaçların yaklaşık %50'si doğal kaynaklı veya türevlerindendir. Antibiyotikler (örn. penisilin, tetrasiklin, eritromisin), antiparazitikler (örn. avermektin), antimalaryaller (örn. kinin, artemisinin), lipid kontrol ajanları (örn. lovastatin ve analogları), organ nakilleri için immünosupresanlar (örn. siklosporin, rapamisinler), antikanser ilaçlar (örn. taksol, doksorubisin),3 ] Doğal kaynaklardan ilaç geliştirmedeki artışla birlikte, bitkilerden antimikrobiyal veya anti-enfektif bileşenlerin taranmasına yönelik ilgide eşzamanlı artış gözlemlendi . Antimikrobiyal özellikleri ile iyi bilinen bitkiler. Hindistan'da bulunan 17.000 yüksek bitki türünden 7500'ü tıbbi kullanımlarıyla iyi bilindiğinden, Hint şifalı bitkileri yeni kurşunun tanımlanması ve geliştirilmesi için en umut verici kaynaklar olmaya devam etmektedir. Bu zengin doğal kaynak havuzuyla Hindistan, bitkisel ilaç geliştirme merkezi olmaya devam ediyor.[ 5 ] Tüm bunlar dikkate alındığında, bu çalışmada, 10 farklı Hint bitkisinden potansiyel kandida karşıtı özellikler tarandı.

          Mevcut araştırmada, Tridax procumbence , Adhatoda vasica , Azadirachta indica , Ocimum sanctum , Lawsonia inermis , Acacia cavena , Pongamia pinnata , Eucalyptus spp., Solanum trilobatum ve Acalypha indica'nın yaprak özlerinin anti-kandidal aktivitesi değerlendirildi. Bu 10 bitki antimikrobiyal ve tıbbi özellikleriyle iyi biliniyordu.[ 6 , 7 , 8 , 9 ] Bu bitkiler antimikrobiyal özellikleriyle bilinmesine rağmen, Candida'nın kontrolündeki spesifik etkisispp. birkaç ön anti-kandidal tarama dışında pek araştırılmadı. Bu bitkilerin farklı çözücü türleri ve sulu özleri, başka bir yerde anti-kandidal aktivite açısından test edildi. Sulu ekstraktların çoğu, anti-kandidal aktivite göstermede başarısız oldu. Bu bitkilerden anti-kandidal biyoaktif maddelerin bu şekilde ekstraksiyonu için kullanılan solventler arasında alkol (metanol, etanol), kloroform, benzen, eter ve heksan yer alır. Bunların arasında, bazı bitkilerin alkollü ekstraktları bir miktar umut vaat etti[ 10 , 11 , 12 ] yine de bu ön tarama dışında, Candida spp . üzerindeki spesifik etkisi için daha fazla test edilmediler . Bildiğimiz kadarıyla bu bitkilerin etil asetat ekstraktının insan sağlığı üzerine etkisine dair kapsamlı bir çalışma bulunmamaktadır.Candida spp. Bu nedenle, bu çalışma için bu bitkilerin etil asetat özleri seçilmiştir.

          Git: Malzemeler ve yöntemler
          Candida Suşları (Standart Suş)
          Ulusal Endüstriyel Mikroorganizmalar Koleksiyonu, Ulusal Kimya Laboratuvarı, Pune, Hindistan'dan elde edilen Candida albicans NCIM 3074 suşları, standart test organizması olarak kullanıldı.

          Bitki Özü Hazırlama
          Seçilen bitkilerden yapraklar ayrı ayrı toplandı, gölgede kurutuldu ve ince toz haline getirildi. Fitokimyasalların ekstraksiyonu için etil asetat kullanılmıştır. Toz haline getirilmiş yaprak, 3 saat boyunca eşit hacimde etil asetat ile ıslatıldı ve daha sonra gerekli miktarda etil asetat (güçlendirilmiş yaprağın hacminin yaklaşık iki katı) ile havan ve tokmak kullanılarak iyice öğütüldü ve daha sonra Whatman No. 1 filtre kağıdı kullanılarak süzme işlemine tabi tutuldu. Süzülen ekstraktlar havayla kurutuldu. Tartılan miktarda hava ile kurutulmuş bitki ekstraktları, ölçülen miktarda dimetil sülfoksit (DMSO) içinde eritildi ve daha ileri çalışmalar için kullanıldı.

          Disk Agar Silindir Yöntemi
          Tüm bitki ekstraktlarının taranması disk agar silindir yöntemi kullanılarak yapılmıştır. Kısaca Sabouraud dekstroz agar (SDA) kullanılarak C. albicans şeridi hazırlandı ve steril delici kullanılarak agar silindirleri yapıldı. Bitki özleri (500 μg/ml) içeren steril disk, taze steril SDA plakalarına yerleştirildi ve üstte kültür içeren silindirler, ilgili kontrollerle diskin üzerine yerleştirildi ve 48-72 saat inkübe edildi ve disk etrafındaki büyüme gözlendi.

          Mikrop Tüpü İnhibisyon Testi
          Bitki ekstraktlarının germ tüpü inhibe edici aktivitesi, Kretschmar ve diğerleri [ 13 ] tarafından küçük modifikasyonla açıklanan yöntem kullanılarak tarandı . Disk agar silindir yönteminde anti-kandidal aktivite gösteren kurutulmuş bitki ekstraktı 500 µg/ml konsantrasyonda test tüpüne alınarak 10 µl DMSO içerisinde süspansiyon haline getirildi. Buna 990 µl sığır serumu eklendi ve orta log fazı (10 5 – 10 7 hücre/ml) ile dolu öze C. albicans kültürü seruma aşılandı ve 3 saat 37°C'de inkübe edildi. İnkübasyondan sonra mikroskop altında germ tüpü oluşumu gözlendi. Kontrol tüpleri, ekstrakt muamelesi yapılmadan benzer şekilde muhafaza edildi ve mikrop tüpü oluşumunun karşılaştırılması için gözlendi.

          Salgılanmış Aspartil Proteinaz Plaka Deneyi
          C. albicans'ın durağan faz kültürü, Kumar ve diğ . (2006). 100 µl mid-log faz C. albicans , L. inermis ile aşılanmış Sabouraud Dextrose (SD) suyunailgili test tüplerinde 0.5 mg/ml ve 0.75 mg/ml konsantrasyonunda ekstraktlar eklendi. Toplam hacim, SD besiyeri kullanılarak bir ml'ye tamamlandı. Test tüpleri 37°C'de 6 saat 140 rpm'de inkübe edildi. İnkübasyondan sonra peletler toplandı ve üç kez fosfat tamponlu tuzlu su (pH 7.2) ile yıkandı. Yıkanan pelet, 100 ul SD besiyerinde yeniden süspanse edildi. Yeniden süspanse edilmiş pelet, SAP indüksiyon ortamı (%23.4 Maya Karbon Bazı, %2 maya özütü ve %4 BSA, pH 5.0) üzerine yerleştirilmiş steril diske yüklendi. Plakalar 37°C'de 3-5 gün inkübe edildi. İnkübasyondan sonra, plakalar %20 TCA (10 dakika) ile sulandırıldı, %10 asetik asitle asitleştirilmiş (10 dakika) metanol içinde çözülmüş %1.25 amido siyahı ile boyandı ve %15 asetik asitle (10 dakika) lekesi giderildi (10 dakika) ve şeffaf olduğu gözlendi diskin etrafındaki bölge.

          Proteaz Aktivitesi
          C. albicans'ta L. inermis ekstraktının proteaz inhibe edici aktivitesi, küçük bir modifikasyonla Schmidt ve diğerleri [ 15 ] tarafından açıklanan zimogram yöntemi kullanılarak değerlendirildi . C. albicans NCIM 3074'ün orta-log faz kültürü peleti iki kez normal salinle yıkandı ve peletleri toplamak için santrifüjlendi. 100 μL C. albicanshücre süspansiyonu, %1 glikoz, %3 maya karbon bazı ve %1 sığır serum albümini (BSA) içeren proteaz indüksiyon ortamında aşılandı. Kültür aşılandıktan hemen sonra ilgili test tüplerine 500 μg mL-1 etil asetat ekstraktı eklendi. Karışım 24-48 saat 37°C'de 150 rpm'de çalkalayıcıda inkübe edildi. İnkübasyondan sonra, hücreler topaklandı ve ultrasonikatör kullanılarak parçalandı. Lowry ve ark .[ 16] kullanılarak protein tahmini sonrasında hücre lizatı], proteaz aktivitesini kontrol etmek için zimografik çalışmalarda kullanıldı. Proteaz inhibisyon aktivitesini saptamak için akrilamid jele dahil edilen %1 kazein ile zimogram yapıldı. Proteaz inhibe edici aktivite, kazeinin bölünmesinin olmaması (bant oluşumu olmaması) ile gösterildi ve kontrol gruplarında proteazlar tarafından tamamen kazein bölünmesi (beyaz bant oluşumu) ile karşılaştırılabilir.

          Fosfolipaz İnhibitör Aktivitesi
          L. inermis ekstresi (300 μg/ml) ile muamele edilmiş C. albicans'ın fosfolipaz aktivitesinin taranması, Leidich ve ark .[ 17] protokolü kullanılarak yapılmıştır.] Kısaca, 1 ml numune (hücre lizatı) ve 1 ml %60 perklorik asit içeren tahlil karışımı, çözelti renksiz hale gelinceye kadar 200°C'de bir kum banyosunda ısıtıldı. Ardından 1 ml %60'lık perklorik asit ilave edildi ve distile su kullanılarak nihai hacim 9.1 ml'ye tamamlandı. Buna 0,5 ml molibdat II reaktifi ve 0,4 ml ANSA reaktif karışımı eklendi. Tüpler iyice çalkalandı ve 8 dakika kaynar su banyosunda ısıtıldı. Oluşan mavi renk 680 nm'de spektrofotometre kullanılarak okunmuştur. Fosfolipaz aktivitesindeki yüzde değişim, kontrol ve tedavi edilen grupların absorbansı karşılaştırılarak hesaplandı.

          Aspartat Dehidrojenaz Aktivitesi
          Analiz, Gennady tarafından tarif edilen yöntem kullanılarak yapıldı.[ 18 ] Bu çalışma için 0.5 mg/ml konsantrasyonda L. inermis özleri ile işlenmiş C. albicans'ın orta-log fazlı SD besiyeri kültürü kullanıldı. Muamele edilmemiş kültür ve DMSO ile muamele edilmiş kültürler, sırasıyla kontrol ve DMSO kontrol numuneleri olarak kullanıldı. İnkübasyon süresinden sonra hücreler peletlendi, yıkandı ve buz soğukluğunda ekstraksiyon tamponunda (62.5 mM tris-Cl, pH 6.8) yeniden süspanse edildi. Toplam çözünür proteinler, sonikasyon yoluyla özümlendi ve enzim deneyi için kullanıldı.

          Doğal jel elektroforezi, standart denatüre olmayan ve indirgeyici olmayan doğal koşullar altında çalışan tampon (pH 8.3) olarak tris-glisin kullanılarak 15 ± 1°C'de gerçekleştirildi. Elektroforez uygulanmış numuneler, 0,015 M sodyum fosfat tamponu pH 7,0–50 ml, L-aspartik asit (sodyum tuzu) - 50 mg, %1,25 MTT 1 ml, %1 PMS 0,5 ml ve %1 NAD 2 içeren boyama solüsyonu kullanılarak boyamaya tabi tutuldu. ml. Jel, koyu mavi bantlar görünene kadar karanlıkta 37°C'de boyama solüsyonunda inkübe edildi. Lekeli jel, %25 etanol kullanılarak sabitlendi ve aspartat dehidrojenaz aktivitesi gösteren bantlar için gözlendi.

          Git: Sonuçlar
          Bitki Ekstraktlarının Anti-kandidal Aktivitesinin Taranması
          Tüm bitkilerin etil asetat ekstraktları, disk agar silindir yöntemi kullanılarak C. albicans'a karşı anti-kandidal aktivite açısından tarandı . Taranan 10 bitki özü arasında, beş bitkiden, L. inermis (BDUE0110), A. indica , S. trilobatum , A. indica ve A. vasica'dan elde edilen özler , disk agar silindiri kullanılarak yapılan ön taramada önemli ölçüde anti-kandidal aktivite gösterdi. yöntem [Şekil 1]. Bunlar arasında L. inermis (BUDUE0110) ve A. indica özleri, disk üzerinde kandidal büyümenin tamamen engellendiğini gösterdi. Şaşırtıcı bir şekilde, Eucalyptus spp . dahil olmak üzere iyi bilinen antimikrobiyal aktiviteye sahip diğer bitki özleri . ve O. sanctum ümit verici anti-kandidal aktivite göstermedi.

          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJPharm-48-47-g001.jpg

          Şekil 1
          Candida albicans'ta bitki özlerinin anti-kandidal aktivitesinin taranması Germ Tüpü İnhibitör Aktivitesi


          Tüm bitki ekstraktlarının germ tüpü inhibitör aktivitesi, 500 μg/ml konsantrasyonda C. albicans'a karşı test edildi. Altı bitki ekstresi L. inermis , Eucalyptus spp., A. indica , S. trilobatum , A. indica ve P. pinnata , test edilen konsantrasyonda C. albicans'a karşı mikrop tüpü inhibe edici aktivite gösterdi . Test edilen bitki özlerinden L. inermis , inkübasyon süresinin (3 saat) sonuna kadar üreme tüpü oluşumunun tamamen engellendiğini gösterdi [şekil 2Vetablo 1]. Diğer bitki ekstraktları inkübasyonun ilk saatinde C. albicans üzerinde germ tube inhibitör aktivite göstermiş ve inkübasyon süresinin sonunda (üçüncü saat) germ tube indüksiyonu gözlenmiştir.
          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJPharm-48-47-g002.jpg
          şekil 2
          Candida albicans'ta bitki ekstraktlarının germ tüpü inhibitör aktivitesinin taranması tablo 1


          Bitki özlerinin konsolide anti-kandidal aktivite tarama sonuçları


          Salgılanmış Aspartil Proteaz Plaka Deneyi
          L. inermis ekstraktının C. albicans proteaz enzim aktivitesi üzerindeki etkisi 500 μg/ml ve 750 μg/ml olmak üzere iki farklı konsantrasyonda test edildi. SAP tahlili, L. inermis ekstresi muamelesinde C. albicans'ta doza bağlı proteaz inhibe edici aktivite gösterdi . Kontrol ile karşılaştırıldığında, ekstrakt tedavisi, ekstraktların 500 μg/ml ve 750 μg/ml konsantrasyon tedavisinde sırasıyla %27 ve %33 proteaz inhibisyonu ile sonuçlanmıştır [Tablo 2]. Tablo 2


          Candida albicans'ta Lawsonia inermis özlerinin proteaz inhibitör aktivitesi


          Proteaz İnhibitör Aktivite Taraması


          De olduğu gibiFigür 3, Zymogram sonuçları, kontrol numunelerinde kazeinin (kalın beyaz bant oluşumu) ve işlenmiş numunelerde sağlam kazeinin (daha az yoğun bant oluşumu) bozunmasını gösterir. Bu, L. inermis özütünün aktivitesinin proteaz inhibe edici aktivitesini gösterir .


          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: IJPharm-48-47-g005.jpg


          Figür 3
          Candida albicans'ta Lawsonia inermis ekstresi tedavisinin proteaz inhibitör aktivitesi

          Fosfolipaz İnhibitör Aktivitesi
          L. inermis ekstraktının işlenmesi üzerine C. albicans'ın fosfolipaz aktivitesindeki değişikliğin spektroskopik analizi şu tabloda verilmiştir:Tablo 3. Kına özü tedavisi fosfolipaz inhibitör aktivite gösterir. Kına ekstraktı ile tedavi edilen C. albicans'ta fosfolipaz aktivitesinin, tedavi edilmeyen kontrol grubu ile karşılaştırıldığında yüzde inhibisyonu, 300 μg/ml uygulamasında %44,5 olarak bulunmuştur.

          Tablo 3
          Lawsonia inermis ekstraktlarının Candida albicans'ta fosfolipaz
          inhibitör aktivitesi


          Aspartat Semialdehit Dehidrogenaz İnhibitör Aktivitesi
          L. inermis ekstraktının C. albicans'ta aspartat semialdehit dehidrojenaz (ASADH) aktivitesini tamamen inhibe ettiği bulundu . Tedavi edilmemiş kontrol ve DMSO kontrolü C. albicans grubu, sırasıyla Rm 0.422 ve 0.672'de iki ayrı bant gösterdi. Bunlar arasında Rm 0.672 olan bandın öne çıkan bant olduğu görülmüştür. Şaşırtıcı bir şekilde L. inermis (500 μg/ml) tedavisi, C. albicans'ta ASADH ekspresyonunu tamamen inhibe etti [Şekil 4] tedavi grubunda her iki izoformun (bant) olmamasından da anlaşılacağı gibi.

          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJPharm-48-47-g007.jpg

          Şekil 4
          Kontrol ve dimetil sülfoksit kontrol gruplarıyla karşılaştırmalı olarak Lawsonia inermis ile işlenmiş Candida albicans'ın aspartat dehidrojenaz aktivitesinin doğal jel-PAGE profili

          Git: Tartışma
          Kandidiyazis, bağışıklığı baskılanmış hastaları etkileyen en yaygın ve iyi karakterize edilmiş dimorfik mantar enfeksiyonudur. Farklı ilaç duyarlılığı, yeni ilaca dirençli türlerin ortaya çıkışı ve Candida spp.'nin farklı genotipik ve fenotipik ifadesi. diyabet, kanser ve AIDS gibi bağışıklığı baskılanmış durumlarda tedavi zorluğunu abartır.[ 19 , 2 , 20 ] Bu daha sonra yeni anti-kandidal ilaçların geliştirilmesi ihtiyacını güçlendirir. Muhtemelen, bu tür zorlukların bir sonucu olarak, doğal kaynaklardan, özellikle bitkilerden antimikrobiyal veya anti-enfektif bileşenlerin taranmasında artış vardır.[ 4] Benzer bir ilgiyle, bu çalışmada, 10 farklı bitkinin anti-kandidal potansiyel(ler)ini taramak ve belirlemek için çaba gösterilmiştir. Bu bitkilerin antimikrobiyal özelliklere sahip olduğu zaten kanıtlanmıştır, ancak anti-kandidal özelliklerine dair ikna edici herhangi bir kanıt veya ayrıntılı çalışma yoktur. Bu bitkiler kullanılarak yapılan bu tür araştırmalar, anti-kandidal tarama için fitokimyasalları çıkarmak için ortam olarak su, alkol (etanol, metanol) ve kloroform ve heksan gibi organik çözücüler kullandı.[ 10 , 11 , 12] Bu bitkilerden antimikrobiyal potansiyelin ekstraksiyonu için ekstraksiyon ortamı olarak etil asetatın değerlendirilmesi çok seyrekti. Etil asetat, ilaç geliştirmede ilaç endüstrisinde kullanım için nispeten güvenli ve metanol, etanol, kloroform ve hekzana göre daha çok tercih edilen Sınıf III bir çözücüdür. Bu solvent, anti-kandidal aktiviteyi taramak için araştırılmadığından, bu çalışmada, seçilen bitkilerden potansiyel anti-kandidal kurşunların ekstraksiyonu için tercih edilen solvent olarak etil asetat seçildi.

          Disk Agar Silindir Difüzyon Yöntemi
          Hem hidrofobik hem de hidrofilik bileşiklerin antimikrobiyal potansiyelini etkili bir şekilde taramak için disk agar silindir yöntemi kullanıldı. Bu yöntem, ortamda yayılamayan hidrofobik bileşiklerin antimikrobiyal aktivitelerini taramak için uygundur. Diske yüklendiğinde, bu bileşikler disk yüzeyinde sıkışıp kalacaktır. Agar silindiri içeren tohum aşıları, bu hapsolmuş hidrofobik bileşiklerin antimikrobiyal özelliklere sahip olması koşuluyla, disk üzerine yerleştirildiğinde disk üzerinde büyümeyecektir. Test edilen 10 bitki özü arasında L. inermis ve A. indicaekstraktlar, bu ekstraktlarda potansiyel anti-kandidal bileşiklerin olası varlığını gösteren tam bir büyüme inhibisyonu gösterdi. Bu, spesifik anti-kandidal ajanların varlığını doğrulamak için daha fazla fitokimyasal profilleme çalışmasını garanti eder.

          Germ Tüpü İnhibitör Aktivitesi
          Bu en hızlı, basit ve etkili maya tarama yollarından biri küf kayması inhibitörü germ tüpü inhibitör çalışmasıdır. Bu çalışmada L. inermis ekstraktının C. albicans'ta germ tüpü oluşumunu inkübasyon süresinin sonuna kadar tamamen engellediğini tespit ettik. Diğer bitki özleri Eucalyptus spp., S. trilobatum , A. indica , P. pinnata ve A. indica kısmi veya geçici germ tüpü inhibitör aktivite göstermiş ancak tam inhibisyon gösterememiştir. Bildiğimiz kadarıyla bu, L. inermis'in germ tüpü inhibitör aktivitesini bildiren ilk çalışmadır.çıkarmak. Bu ekstrakt germ tüpü oluşumunu tamamen engelleyebildiğinden, hif geçişini engelleme potansiyeli açısından bu daha fazla araştırılabilir ve bu nedenle invaziv enfeksiyonların önlenmesinde kullanılabilir. tartışıldığı gibit ablo 1, taranan 10 bitki arasında sadece L. inermis germ tüpü oluşumunun ve kandidal büyümenin tamamen engellendiğini gösterdi. Bu nedenle, bu bitki özü kullanılarak ileri çalışmalar yapılmıştır.

          Proteaz İnhibitör Aktivite
          Candida türleri tarafından üretilen hücre dışı proteaz . patogenezi için gerekli olan en önemli virülans faktörlerinden biri olduğu kanıtlanmıştır.
          Bu çalışmada L. inermis ekstraktının proteaz inhibe edici aktiviteye sahip olduğu bulundu. Bildiğimiz kadarıyla bu, L. inermis ekstraktının C. albicans üzerindeki proteaz inhibitör etkisine ilişkin ilk rapordur . Proteaz üretimi , hif oluşumu, adezyon ve fenotipik geçiş dahil olmak üzere C. albicans'ın bir dizi başka varsayılan virülans özelliği ile ilişkilidir .[ 21 , 22] Bu ekstraktın, kandidal patogenez için önemli bir virülans faktörü olan proteazı inhibe ettiği bulunduğundan, bu, anti-kandidal kurşun gelişimi için potansiyel bir kaynak olabilir. Bu ön araştırmaya ek olarak, L. inermis ekstraktının proteaz inhibisyonunun tam mekanizması ve kapsamı hakkında daha fazla çalışmanın değerlendirilmesi gerekmektedir.

          Fosfolipaz İnhibitör Aktivitesi
          Fosfolipaz , fosfolipidleri hidrolize ederek istilacı enfeksiyona neden olan C. albicans'ta kanıtlanmış öldürücü enzimlerden biridir . C. albicans , fosfolipaz B, D ve lizofosfolipazlar dahil olmak üzere farklı tipte fosfolipazlardan oluşur.[ 23 ] Bu çalışmada, L. inermis ekstresi, genel fosfolipaz inhibe edici aktivite açısından değerlendirildi. Spektrofotometrik analiz, L. inermis'in fosfolipaz inhibe edici aktivitesini doğrular . Literatür araştırmamızın en iyisine göre bu, L. inermis'in C. albicans üzerindeki fosfolipaz inhibitör aktivitesine ilişkin ilk rapordur.. Bu ön araştırmaya ek olarak, L. inermis ekstraktının fosfolipaz inhibisyonunun tam mekanizması ve kapsamı hakkında daha fazla çalışmanın değerlendirilmesi gerekmektedir.

          Aspartat Semialdehit Dehidrogenaz İnhibitör Aktivitesi
          L. inermis ekstresi tedavisi, ASADH'nin ifadesini tamamen engeller. L. inermis'in bu tür ASADH inhibe edici aktivitesi başka yerde bildirilmemiştir. ASADH, aspartat biyosentetik yolunda beta-aspartil fosfatın L-aspartat-β-semialdehide indirgeyici defosforilasyonunu katalize ettiği mikroorganizmalarda ve bitkilerde bulunan bir oksidoredüktaz enzimidir. İnsanlarda ve diğer ökaryotik organizmalarda aspartat yolunun olmaması, ASADH'yi yeni mantar öldürücü bileşiklerin geliştirilmesi için çekici bir hedef haline getirir. Bu enzimin [aspartat semialdehit dehidrojenaz (ASADH)] inhibisyonu, (metiyonin, treonin ve izolösin) amino asit sentezinin inhibisyonuna ve hücre duvarı biyosentezinde kusura yol açar, bu da sonuçta ölüme yol açar.[24 , 25 ] Böylece , L. inermis ASADH inhibe edici aktiviteye sahip ekstrakt, anti-kandidal ilaç gelişimi için potansiyel bir kaynak olabilir.

          Git: Çözüm
          Bu çalışmada antimikrobiyal özellik gösteren 10 bitki anti-kandidal aktivite açısından tarandı. Organik tuzların özütlenmesinde yararlı bir polar aprotik çözücü olan etil asetat, bu bitkilerden anti-kandidal kurşunların özütlenmesi için kullanıldı. Bunların arasında L. inermis çok etkili anti-kandidal aktivite göstermiştir. Bu ekstraktın germ tüpü inhibisyonu, proteaz, fosfolipazlar ve aspartat dehidrojenaz inhibitör aktivitesi dahil olmak üzere birden fazla etki alanına sahip olduğu bulunmuştur. L. inermis'in etil asetat ekstraktının , etkili anti-kandidal ilaç geliştirme için potansiyel bir lider olabileceği sonucuna vardık .

          Mali Destek ve Sponsorluk
          sıfır. Çıkar çatışmaları
          Herhangi bir çıkar çatışması yoktur.
          Git: Referanslar

          1. Pfaller MA, Diekema DJ. İnvaziv kandidiyazis epidemiyolojisi: Kalıcı bir halk sağlığı sorunu. Clin Microbiol Rev. 2007; 20 :133–63. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          2. Kahverengi AJ, Odds FC, Gow NA. Candida albicans'ta enfeksiyonla ilişkili gen ekspresyonu . Curr Opin Microbiol. 2007; 10 :307–13. [ PubMed ] [ Google Akademik ]
          3. Dahanukar SA, Kulkarni RA, Rege NN. Tıbbi bitkilerin ve doğal ürünlerin farmakolojisi. Hintli J Pharmacol. 2000; 32 :S81–118. [ Google Akademik ]
          4. Rios JL, Recio MC. Şifalı bitkiler ve antimikrobiyal aktivite. J Etnofarmakol. 2005; 100 :80–4. [ PubMed ] [ Google Akademik ]
          5. Kala CP, Dhyani PP, Sajwan BS. Kuzey Hindistan'da şifalı bitkiler sektörünün geliştirilmesi: Zorluklar ve fırsatlar. J Ethnobiol Etnomed. 2006; 2:32 . [ Google Akademik ]
          6. Taddei A, Rosas-Romero AJ. Tridax procumbens'ten ekstraktların biyoaktivite çalışmaları . Bitki ilacı. 2000; 7 :235–8. [ PubMed ] [ Google Akademik ]
          7. Parthasarathy H, Thombare S. Azadirachta indica , Syzygium aromaticum ve Cinnamomum zeyalnicum'un oral mikrofloraya karşı antimikrobiyal aktivitesinin değerlendirilmesi . Asya J Uzm Sci. 2013; 27 :13–6. [ Google Akademik ]
          8. Pathak AK. Bazı bitkilerin sulu ekstraktlarının anti- Candida aktivitesi. Indian J Fundam App Life Sci. 2012; 2 :1–6. [ Google Akademik ]
          9. Kumar A, Bhatii V, Kumar A, Patil S, Bhatia V, Kumar A. Candida türlerine karşı antifungal aktivite için çeşitli bitki özlerinin taranması. Dünya J Sci Technol. 2011; 1 :43–7. [ Google Akademik ]
          10. Dinesh BP, Subhasree RS. Lawsonia inermis'in antimikrobiyal aktiviteleri – Bir inceleme. Acad J Bitki Bilimi 2009; 2 :231–2. [ Google Akademik ]
          11. Habbal OA, Al-Jabri AA, El-Hag AH. Lawsonia inermis'in (kına) antimikrobiyal özellikleri : Bir gözden geçirme. Aust J Med Herb. 2007; 19 :173–6. [ Google Akademik ]
          12. Habbal OA, Al-Jabri AA, El-Hag AH, Al-Mahrooqi ZH, Al-Hashmi NA. Lawsonia inermis Linn'in (kına) in vitro antimikrobiyal aktivitesi . Umman kınası üzerine bir pilot çalışma. Suudi Med J. 2005; 26 :69–72. [ PubMed ] [ Google Akademik ]
          13. Kretschmar M, Hube B, Bertsch T, Sanglard D, Merker R, Schröder M, et al. Germ tüpleri ve proteinaz aktivitesi, fare peritonitinde Candida albicans'ın virülansına katkıda bulunur . Bağışıklık bulaştırın. 1999; 67 :6637–42. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          14. Kumar CPG, Kumar SS, Menon T. Bağışıklığı baskılanmış hastalardan elde edilen klinik Candida izolatlarının fosfolipaz ve proteinaz aktiviteleri . Mikopatoloji. 2006; 161 :213–8. [ PubMed ] [ Google Akademik ]
          15. Schmidt TM, Bleakley B, Nealson KH. Böcek patojeni Xenorhabdus luminescens'ten hücre dışı bir proteazın karakterizasyonu . Uygulama Ortamı Mikrobiol. 1988; 54 :2793–7. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          16. Lowry OH, Rosebrough NJ, Farr AL, Randall RJ. Folin fenol maddesi ile Protein ölçümü. J Biol Chem. 1951; 193 :265–75. [ PubMed ] [ Google Akademik ]
          17. Leidich SD, İbrahim AS, Fu Y, Koul A, Jessup C, Vitullo J, et al. Candida albicans'ın patojenitesinde yer alan bir fosfolipaz B geni olan caPLB1'in klonlanması ve bozulması . J Biol Chem. 1998; 273 :26078–86. [ PubMed ] [ Google Akademik ]
          18. Gennady PM. Washington, DC: CRC Basını; 2003. Elektroforetik Jellerde Enzimlerin Saptanması El Kitabı; P. 113. [ Google Akademik ]
          19. Pfaller MA, Diekema DJ. Nadir ve ortaya çıkan fırsatçı mantar patojenleri: Candida albicans ve Aspergillus fumigatus'un ötesinde direnç endişesi . J Clin Microbiol. 2004; 42 :4419–31. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          20. Antony G, Saralaya V, Gopalkrishna Bhat K, Shalini Shenoy M, Shivananda PG. Fenotipik geçişin , diyabetik hastalarda kandidiyaza neden olan Candida albicans tarafından virülans faktörlerinin ekspresyonu üzerindeki etkisi . Rahip Iberoam Micol. 2009; 26 :202–5. [ PubMed ] [ Google Akademik ]
          21. Aboellil AH, Al-Tuwaijri MM. Suudi Arabistan'da Candida albicans üzerine bazı alternatif tıp ve biyolojik faktörlerin etkisi . J Maya Mantarı Arş. 2010; 1 :100–7. [ Google Akademik ]
          22. Rayavarapu KA, Kaladhar DS, Kumar SS. Lawsonia inermis'in (Kına) su patojenleri üzerindeki antimikrobiyal aktivitesinin değerlendirilmesi . J Pharm Biomed Sci. 2011; 7 :1–3. [ Google Akademik ]
          23. Ghannoum MA. Fosfolipazların virülans ve mantar patogenezindeki potansiyel rolü. Clin Microbiol Rev. 2000; 13 :122–43. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          24. Hadfield A, Shammas C, Kryger G, Ringe D, Petsko GA, Ouyang J, et al. Potansiyel antimikrobiyal hedef aspartat semialdehit dehidrojenazın aktif bölge analizi. Biyokimya. 2001; 40 :14475–83. [ PubMed ] [ Google Akademik ]
          25. Viyola RE. Amino asit biyosentezinin aspartat ailesinin merkezi enzimleri. Acc Chem Res. 2001; 34 :339–49. [ PubMed ] [ Google Akademik ]

          Yorum yap

          Hazırlanıyor...
          X