Duyuru

Collapse
No announcement yet.

Tarcın Yağı, Cinnamomum verum*oil

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Tarcın Yağı, Cinnamomum verum*oil

    Cinnamomum verum yaprağı uçucu yağının Candida türlerinin virülans faktörleri üzerine etkisi ve Galleria mellonella modeli ile in vivo toksisitenin belirlenmesi

    Gayan Kanchana Wijesinghe , 1, + Flávia Camila Maia , 1 Thaís Rossini de Oliveira , 1 Simone N Busato de Feiria , 1 Felipe Joia , 1 Janaina Priscila Barbosa , 1 Giovana Cláudia Boni , 1 Janaina de Cássia Orlandi Sardi , 2 Pedro Luiz Rosalen , 2 ve José Francisco Höfling 1
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
    Bu makale, PMC'deki diğer makaleler tarafından alıntılanmıştır .
    Git: Soyut

    ARKA FON


    Cinnamomum verum'dan ekstrakte edilen uçucu yağlar (EO) , yüzyıllardır antimikrobiyal ajan olarak kullanılmıştır. C. verum yaprağı yağının mikroorganizmaların virülansına karşı etkileri henüz iyi çalışılmamıştır. AMAÇLAR


    Bu çalışma etkisini değerlendiren C. verum üç hastalık oluşturma faktörlerinin karşı yaprağı yağı , Candida albicans , C. tropicalis ve C dubliniensis'in ve in vivo toksisitesi. YÖNTEMLER


    EO'nun kimyasal bileşimi, gaz kromatografisi-kütle spektrometrisi (GC-MS) kullanılarak belirlendi. Minimum inhibitör konsantrasyon (MIC), klinik ve laboratuvar standartları enstitüsü (CLSI) M27-A3 broth mikrodilüsyonu kullanılarak belirlendi. EO'nun ilk yapışma üzerindeki etkisi, Candida hücrelerinin polistiren yüzeyine 2 saat yapışmasına izin verildikten sonra XTT tahlili kullanılarak ölçülmüştür . EO varlığında Candida'nın biyofilm oluşumu, XTT canlılık tahlili kullanılarak ölçülmüştür. Germ tüpü oluşumunun azaltılması üzerindeki etkinlik, standart protokol kullanılarak değerlendirildi. EO tedavisi altında biyofilm oluşumunun ve ilerlemesinin görselleştirilmesi, sırasıyla taramalı elektron mikroskobu (SEM) ve Zaman atlamalı mikroskop kullanılarak yapıldı. EO'nun in-vivo toksisitesi kullanılarak belirlendiGalleria mellonella larvaları. Klorheksidin diglukonat: pozitif kontrol. SONUÇLAR


    Eugenol, EO'nun ana bileşiğiydi. MIC, 1.0 mg/mL idi. İlk yapışma içinde% 50 azalma ile elde edilmiştir C. albicans , C. tropicalis ve C dubliniensis'in 1.0 ile> 2.0 ve 0.34 mg / mL. 0,5 ve 1,0 mg/mL, germ tüpü oluşumunu önemli ölçüde inhibe eder. Biyofilm oluşturmaya yönelik MBIC 50 , ≤ 0.35 mg/mL idi. 1.0 mg/mL, Candida'nın biyofilm ilerlemesini önler . SEM görüntüleri, hücre duvarı hasarları, hücresel büzülmeler ve azalmış hif oluşumu sergiledi. Test edilen herhangi bir konsantrasyonda in-vivo deney modelinde hiçbir öldürücü etki kaydedilmedi . ÇÖZÜM


    C. verum yaprak yağı, Candida'nın virülans faktörlerine karşı etki gösterir ve herhangi bir toksisite göstermez.

    Anahtar kelimeler: Cinnamomum verum, uçucu yağ, Candida spp., biyofilmler, antivirülans, Galleria mellonella
    Candida spp. fırsatçı mantar enfeksiyonlarının en yaygın nedensel ajanıdır ve cilt ve kulak enfeksiyonları, genitoüriner kandidiyazis, hastane pnömonileri, tıbbi cihazla ilişkili enfeksiyonlar ve Kandidemiler dahil yaşamı tehdit etmeyen mukokutanöz hastalıklara invaziv ciddi yaşamı tehdit eden bir dizi duruma yol açar. 1 , 2 , 3 , 4

    Bazı Candida türleri kommensalizm gösterir ve insan vücudunun deri ve mukozal yüzeylerini kolonize eder. Ağır derecede hasta olan veya bağışıklığı zayıf olan hastalar hem yüzeysel hem de yaşamı tehdit eden sistemik Candida enfeksiyonları geliştirmeye daha yatkındır . 5 Enfeksiyonlar için predispozan faktörler: aşırı yaş, hormonal değişiklikler, beslenme yetersizliği, HIV insidansı, sık antimikrobiyal maruziyet, kemoterapötik tedaviler, karbonhidrattan zengin (glikoz) diyetler, protez kullanımı ve düşük bağışıklık. 6 , 7 , 8 , 9 konak faktörleri olarak. Mevcut verilere dayanarak, Candida'nın toplam oluşumu enfeksiyonlar, tüm dünyada 100.000 nüfus başına 1.2-25 vaka veya 1000 hastaneye yatış başına 0.19-2.5 civarındadır. Bunların %13'ü, zayıf bağışıklık vb. gibi altta yatan predispozan faktörü olan hastalarda rapor edilmiştir. 10 , 11

    Tüm Candida türleri arasında, mantar enfeksiyonları vakalarında en sık görülen etiyolojik ajan Candida albicans'tır ve bu hastalık vakalarının %50'sine varan oranda ilişkilidir. 12 Bu tür, çeşitli yerlerde insan vücudunun bulunduğu ortama kolayca uyum sağlama ve çoğalma kapasitesine sahiptir. İnsan vücudunun farklı dokularında hayatta kalabilme yeteneği, hif formu ile maya formu arasındaki morfolojik geçiş kapasitesi ile ilgilidir. 13 Mayer ve arkadaşlarına göre, hif ve maya enfeksiyon sürecinde yer alır ve daha küçük olan maya yayılabilirken, hif proteinazlar ve fosfolipaz enzimleri yardımıyla epiteli geçerek konakçı dokuyu işgal eder, fagositik hücrelerden kaçar. 14 , 15 , 16 , 17 Candida'nın virülansıyla ilişkili başka bir faktörspp. biyofilm oluşturma, hücre yapışmasını ve biyofilmin hücre dışı matrisinin oluşumunu ve ayrıca daha fazla yapışmasını destekleyen proteinlerin sentezini teşvik etme yeteneğidir. Biyofilm yapısı, hücre dışı matrise penetrasyon zorluğu ve bağışıklık sisteminin etkisi nedeniyle antimikrobiyal ajanlara karşı direnci arttırır, ayrıca akış pompaları olarak antifungallere direnç mekanizmalarının gen ekspresyonunun artmasına izin verir. 18

    Birçok bakteri ve mantar türünde olduğu gibi, antimikrobiyal direnç Candida spp. Hastalık Kontrol ve Önleme Merkezi (CDC), 2012-2016 yılları arasında Candida izolatlarına neden olan tüm sistemik enfeksiyonların yaklaşık %7 ve %1,6'sının birinci sıra antifungal ilaca, flukonazole ve ekinokandinlere direnç gösterdiğini bildirmektedir. 19 Bu nedenle, mevcut antifungal ajanlarla ilişkili toksisitelerin ve ilaç etkileşimlerinin üstesinden gelmenin yanı sıra ortaya çıkan antimikrobiyal direnç geliştirme sorununu etkin bir şekilde ele almak için yeni terapötik seçeneklere ihtiyaç vardır. 20Bitki kaynaklı doğal terapötikler, düşük toksisitesi, kolay erişilebilirliği, maliyet etkinliği ve yüksek terapötik gücü nedeniyle modern dünyanın büyük çoğunluğu arasında daha popüler hale geliyor. 20 Bu yönüyle Cinnamomum verum / Gerçek Tarçın'ın ekonomik ve farmasötik-tıbbi açıdan büyük ilgi gösterdiği gösterilmiştir. 21

    Tarçın ağacının çeşitli kısımlarından (kabuk, yaprak, meyve ve çiçek vb.) elde edilen fitokimyasallar, eski çağlardan beri mutfak baharatı ve şifalı bitki olarak kullanılmaktadır. Aynı zamanda birçok eski Asya'da (özellikle Hindistan, Çin ve Sri Lanka'da) terapötik müstahzarlarda bir bileşen olarak kullanılmıştır. 21 Geleneksel halk tıbbında tarçın, antimikrobiyal ve anti-parazitik bir ajan olarak kullanımının yanı sıra göz iltihabı, vajinit, romatizma, nevralji, yara ve diş ağrıları gibi birçok hastalık durumunun tedavisinde kullanılmaktadır. Tarçın ayrıca bronşit, kaşıntı, idrar yolları ve sindirim sistemi ile ilgili hastalıkların tedavisinde de faydalıdır. 22

    Birçok rağmen in vitro ile mikrobiyolojik çalışmalar C verum gibi çok sayıda antimikrobiyal direnç sergileyen de dahil olmak üzere sağlık alanında birçok mikrop türleri, ilgili antimikrobiyal aktivite gösterirler Acinetobacter spp., Bacillus spp., Enterobacter spp., Enterococcus faecalis , Escherichia coli , Mycobacterium tuberculosis , Klebsiella pneumoniae ve Haemophilus influenzae vb. 22 Anti- Candida aktivitesi, özellikle Candida spp virülansına etkisi . hala daha az kapsamlıdır.

    Bu çalışma, C. verum yaprağı esansiyel yağlarının (EO) Candida spp.'nin ilk yapışması, germ tüpü oluşumu ve biyofilm oluşumu üzerindeki etkisini değerlendirmeyi ve Galleria mellonella larva modeli kullanılarak in-vivo toksisitesini belirlemeyi amaçlamıştır .

    Git: MALZEMELER VE YÖNTEMLER


    Mantar suşları - Üç Candida tip suşlar, C. albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis (ATCC MYA-646) Piracicaba, Unicamp Mikrobiyoloji ve İmmünoloji Bölgesi, Diş Fakültesi elde edilir, Bu çalışmada Brezilya kullanılmıştır. Candida spp'nin standart suşları . stoklar -80ºC'de ultrafreezerde %80 grycerol içinde muhafaza edildi. Stok organizmaları yeniden aktive etmek için, taze hazırlanmış Saboraud Dextrose Agar (SDA, OXOID) kültür ortamında alt kültürlendi, aerobik olarak 37ºC'de 24 saat inkübe edildi.

    Standart inoküller 5 x 10 tekabül 0.08-0.10 (600 nm) emme eşdeğerdir McFarland ölçek (0.5), ile uygun olarak bulanıklık ayarlanması ile hazırlanmıştır 6 koloni oluşturan birim (CFU) / ml.

    Uçucu yağ - C. verum yapraklarının EO'su, Romik Lanka Marketing Services, Moratuwa, Sri Lanka'dan (WCC/3569) satın alındı. C verum EO 32 mg / mL seyreltilmiş, Tween 80 (% 0.05) çözeltisi ve daha sonra sonifıkasyon ile MOPS [3- (N-morfolino) propan sülfonik asit], 1 döngü ile tamponlanmış Roswell Park Memorial Institute (RPMI) 20 saniye.

    EO'nun kimyasal analizi - C. verum EO'nun kimyasal analizi, HP-6890 (Agilent, ABD) gaz kromatografı ve HP-5975 (Agilent, ABD) seçici kütle dedektörü kullanılarak yapıldı; HP-5MS Kapiler Sütun (30 mx 0,25 mm x 0,25 µm); sıcaklıklar: enjektör (220ºC), dedektör (250ºC), kolon (60ºC), 3ºC/dak, 240ºC; 1.0 mL/dk 18'lik taşıyıcı gazın (yüksek oranda kurutulmuş He) akış hızı . 1.0 uL yağ split modda enjekte edildi ve iyonizasyon kaynağı 70 eV idi. Bileşenlerin bağıl bolluğu aşağıdaki denklem kullanılarak hesaplandı. 23

    Yüzde bolluğu (%) = (Kromatogramın bileşen alanı/toplam alanı) × 100

    Analitleri tanımlamaya yönelik veri tabanı, NIST-11 (Ulusal Standartlar ve Teknoloji Enstitüsü) kütle spektral veri tabanı ve NIST kütle spektral arama programıydı (Sürüm 2.0 g).

    Minimum inhibitör konsantrasyonun (MIC) belirlenmesi - MIC, modifikasyonlu klinik ve laboratuvar standartları enstitüsü (CLSI) M27-A3 broth mikrodilüsyon yöntemi kullanılarak belirlendi. 24 Kısaca, MOPS ile, RPMI 1640 içinde EO seyreltme 100 uL hazırlanan standart mantar hücresi süspansiyonları, 100 uL (1 x 10 ile karıştırıldı 6 aerobik ve ardından, 96 gözlü bir steril ve düz altlı polistiren mikrotiter plakası içinde hücre / ml) 37ºC'de 24 saat inkübasyon. İnkübasyondan sonra plakalar, büyümenin varlığı ve yokluğu (süspansiyonların bulanıklığı) açısından görsel olarak gözlemlendi. Herhangi bir bulanıklık olmaksızın minimum tedavi konsantrasyonu MİK noktası olarak kabul edildi.

    Büyüme kontrolü: EO + standart hücre süspansiyonu yerine 100 µL tamponlu RPMI 1640. Pozitif kontrol: 120 mg/mL klorheksidin diglukonat test edildi.

    İlk yapışma etkisi - etkisi C. verum ile yaprağı yağı C. albicans (ATCC MYA-2876), C dubliniensis (ATCC MYA-646) ve C tropicalis , steril polistiren yüzeye (750 ATCC) yapışma kullanılarak incelenmiştir Raut ve diğerleri tarafından daha önce yayınlanmış metodoloji. 25

    Sabouraud dekstroz agar (SDA) üzerinde 24 saatlik taze Candida kültürlerinden birkaç koloni, etiketli steril kültür ortamı şişesinde 50 mL YPD broth'a inoküle edildi ve 30 rpm'de (Nova) çalkalayıcı bir inkübatörde 35-37ºC'de 18-24 saat inkübe edildi. Aletler, Brezilya).

    İnkübasyondan sonra, hücreler hasat edilmiş ve steril fosfat tamponlu salin (PBS) ile iki kez yıkandı ve inokülüm 1.0 x 10 'a ayarlanmıştır 7 hücre / ml RPMI Neubauer sayım kullanılarak sonra hücreler 1640 ortamında odası sayma geliştirilmiş. 24

    Doksan altı oyuklu steril düz tabanlı mikrotitre plakası bu süspansiyonlarla (100 uL/kuyucuk) tohumlandı ve bir çalkalayıcı inkübatörde (75 rpm, Nova Instruments, Brezilya) 37ºC'de 2 saat boyunca plakaların polistiren yüzeyine yapışmasına izin verildi. 2 mg/mL ila 0.0039 mg/mL (100 µL/kuyu) arasında değişen C. verum yaprağı yağının farklı konsantrasyonlarının varlığı . Yağsız kuyular büyüme kontrolü olarak tutuldu. MOPS+%0.05 Tween 80 ile tamponlanmış RPMI, negatif kontrol kuyularına ilave edildi. Pozitif kontrol olarak MOPS (Sigma-Aldrich, ABD) ile tamponlanmış RPMI 1640 içinde 120 mg/mL klorheksidin diglukonat kullanıldı.

    2 saatlik inkübasyondan sonra, yapışmayan hücreleri çıkarmak için kuyucuklar 200 uL steril normal salin ile yıkandı. Her bir oyuğa bağlı hücreler, XTT metabolik tahlili kullanılarak ölçülmüştür. Kısaca 80 μL XTT [2,3-Bis-(2-Methoxy-4-Nitro-5-Sulfophenol)-2H-Tetrazolium-5-Carboxanilide, Sigma-Aldrich] ve menadion (Sigma-Aldrich) solüsyonu (4 μL) Her kuyucuğa 10 mL XTT içinde menadion eklendi ve plakalar ışıktan korumak için bir parça alüminyum kağıt ile kaplandı ve 2 saat 37 ºC'de inkübe edildi . Daha sonra elde edilen çözeltinin absorbansı 490 nm'de mikrotitre plaka okuyucu /Versa MAX, moleküler Cihazlar, ABD. 26

    Yapıştırılan hücrelerin yüzde azalması, test gruplarının ve negatif kontrol grubunun ortalama XTT aktivitesinin karşılaştırılmasıyla hesaplandı. 24

    Germ tüpü oluşumu üzerindeki etki - Blastoconidia'dan germ tüplerinin oluşumu, gerçek hiflerin gelişiminde ilk adımdır ve morfolojik formlar arasında geçiş yapma yeteneği, potansiyel bir virülans faktörü olarak öne sürülmüştür. Tek hücreli blastokonidyal formla karşılaştırıldığında, hiflerin konak dokulara yapışma ve bu dokulara nüfuz etme yeteneği daha yüksektir.

    Hammer ve diğerleri tarafından açıklanan bir deney. 27 , C. verum yaprak yağının blastoconidia'dan C. albicans (ATCC MYA-2876) ve C. dubliniensis (ATCC MYA-646) hifasına morfolojik geçişi (germ tüpü/hifal oluşumu) üzerindeki etkilerini incelemek için yapılmıştır .

    C. verum yaprağı yağı ve klorheksidin diglukonatın üç konsantrasyonu (1/4 MIC, 1/2 MIC ve MIC) steril cam Bijou şişelerinde 1 mL hacimlerde fetal sığır serumu (FBS) (Sigma-Aldrich) içinde iki katı dozda hazırlandı. istenen nihai konsantrasyon şu şekildedir: 0.25, 0.5, 1.0 ve 0 mg/mL.

    Maya özütü-pepton-dekstroz (YPD) ortamında önceden açıklandığı gibi hazırlanan hücre süspansiyonlarının eşit hacimleri (1 mL) her C. verum yaprağı yağı muamelesine ilave edildi ve iyice karıştırıldı. Tüm tedaviler daha sonra aerobik olarak 37ºC'de çalkalanmadan inkübe edildi ve iyice karıştırıldıktan sonra 0 saat, 2 saat, 4 saat ve 6 saatte örneklendi.

    Hazırlanan süspansiyonlardan 10 μL'lik Neubauer geliştirilmiş sayım odasına her zaman noktasında yüklendi ve 500 Candida hücresindeki çimlenen hücre sayısı (germ tüplü hücreler) sayıldı ve çimlenen hücre sayısına bölünerek germ tüp oluşum yüzdesi hesaplandı. beşe kadar.

    (EO) varlığında biyofilm gelişimi üzerindeki etki - Her organizmanın 100 μL standart inokulumu 96 kuyucuklu steril düz tabanlı bir mikroplaka plakasına aşılandı, ardından çalkalama altında 120 dakika aerobik inkübasyon (37ºC'de 75 rpm)( Nova Aletler, Brezilya). Plaka daha sonra bir kez steril PBS ile yıkandı ve her bir uçucu yağ seyreltisinden 100 µL tedavi kuyularına ayrı ayrı ilave edildi. Büyüme kontrol kuyularına MOPS ile tamponlanmış 100 µL RPMI 1640 ve negatif kontrol kuyularına yağ yerine %0.05 Tween 80 ile tamponlanmış RPMI 1640 ilave edildi. 28 Klorheksidin diglukonat pozitif kontrol olarak kullanıldı. Plaka daha sonra aerobik olarak 37ºC'de 24 saat inkübe edildi.

    Biyofilm biyokütlesi, daha önce açıklanan XTT metabolik tahlili kullanılarak 24 saatlik inkübasyondan sonra ölçülmüştür.

    Biyofilm oluşturmak için minimum toksik konsantrasyon (MTC) - MTC , Candida spp. oluşturan biyofilmleri öldürmek için gereken C. verum yaprağı yağının minimum konsantrasyonunu belirler . tamamen. Biyofilm oluşturan yağın MTC'sini saptamak için CFU tahlili kullanıldı. Farklı konsantrasyonlarda C. verum yaprağı yağı ile 24 saatlik muameleden sonra, yapışan biyofilmin kütlesi steril bir hücre kazıyıcı kullanılarak kazındı ve 100 µL steril normal salin içinde tamamen homojenleştirildi ve daha sonra süspansiyon seri olarak seyreltildi (10 -1 ila 10 -6). Daha sonra, 100 uL'lik bir alikuot, SDA ortamı üzerine kaplanmıştır. Agar plakaları 37ºC'de 24 saat inkübe edildi. İnkübasyondan sonra koloni oluşturan birimler sayıldı ve sonuçlar CFU/mL olarak ifade edildi. 29

    C. verum yaprak yağı varlığında biyofilm oluşturmanın taramalı elektron mikroskobu (SEM) - Farklı konsantrasyonlarda C. verum yağı varlığında oluşturulan biyofilmlerin ultra yapısal özellikleri SEM kullanılarak değerlendirildi. 24

    Steril kapak slipleri ayrı olarak 12 oyuklu hücre kültürü kümesine yerleştirildi. Kapak slipleri, 1 ml standart hücre süspansiyonu (1 x 10 daldırıldı 7 muntazam sağlamak için hücre / mL) , Candida yapışma ve bir sallanan kuluçka makinesi (Nova Instruments, Brezilya) içinde 37 ° C'de 120 dakika inkübe edildi. Daha sonra lameller steril bir forseps kullanılarak dikkatlice hareket ettirildi ve 0,5 mg/mL, 1,0 mg/mL ve 2 mg/mL C. verum içeren yeni 12 oyuklu plakaya nazikçe daldırıldıRPMI 1640 (1 mL/kuyu) içinde yağ. Lameller aerobik olarak 37ºC'de 24 saat inkübe edildi. 24 saatlik inkübasyondan sonra, EO seyreltmelerinin mevcudiyetinde oluşturulmuş biyofilmlere sahip lameller daha sonra steril PBS ile üç kez yıkandı. Daha sonra 4ºC'de %2,5 glutaraldehit içeren yeni bir 24 oyuklu hücre kültürü kümesine aktarıldılar. 60 dakika glutraldehit ile sabitlendikten sonra, numuneler bir dizi etanol solüsyonunda (10 dakika için %70, 10 dakika için %80, 10 dakika için %95 ve mutlak etanol içinde 10 dakika) dehidre edildi ve bir gece boyunca havada kurutuldu. altın ile püskürtme kaplamadan önce inkübatör. Klorheksidin diglukonat (0.25 mg/mL ve 0.125 mg/mL) ve Flukonazol (0.008 mg/mL), maruziyet sonrası biyofilm mimarisini yaygın antifungaller ve C. verum yaprak yağı tedavisi ile karşılaştırmak için pozitif kontroller olarak kullanıldı .

    Biyofilm ilerleme analizi (Zaman Atlamalı Mikroskop) - C. verum yaprak yağı varlığında Candida in vitro biyofilmlerinin ilerlemesi Zaman Atlamalı Mikroskop kullanılarak değerlendirildi. C. verum yaprak yağı varlığında biyofilm ilerlemesinin analizi için , C. albicans (ATCC MYA-2876); C dubliniensis (ATCC MYA-646) ve C tropicalis (ATCC 750), 24 kuyulu hücre kültürü kümesinin polistiren yüzeyi üzerine yapıştırılmış ve üç konsantrasyonda (0.5 mg / mL, 1.0 mg / mL ve 2.0 mg ile tedavi edilmiştir / mL) C. verumDaha önce açıklandığı gibi yaprak yağı. Tedaviyi ekledikten sonra 37ºC'de 24 saatlik inkübasyon sırasında, biyofilm oluşturma görüntüleri 0, 4 saat, 8 saat, 12 saat, 16 saat, 20 saat ve 24 saat zaman atlamalı mikroskop 24 (ZEISS ApoTome.2) kullanılarak yakalandı. ).

    C. verum uçucu yağının G. mellonella larvaları üzerindeki in-vivo toksisitesi - İn-vivo toksisite deneyi, daha önce Wijesinghe (2019) tarafından tarif edildiği gibi G. mellonella larvaları üzerinde gerçekleştirilmiştir .
    24 Çalışma grubu ve kontrol grubu (n = 10) larvaları (RJ Mous Livebait, Hollanda) seçildi ve seçilen larvalar bir Petri kabında (10/petri kabı) tutuldu. Vücutlarında koyu pigmentasyonlar veya belirgin melanizasyon dahil olmak üzere renk değişiklikleri olan larvalar ve 0,2-0,3 g vücut ağırlığının dışındaki larvalar hariç tutulmuştur. C. verum yaprağının EO dilüsyonları steril PBS içinde hazırlandı (Konsantrasyonlar 0,5 ila 1000 mg/mL arasında değişiyordu).

    On (10) uL EO dilüsyonu, 1 mL'lik bir şırınga kullanılarak larvaların son sol ön bacağından hemosele enjekte edildi. EO uygulanmadan önce prick alanı %70 etanol ile dekontamine edildi. Larva içeren tabaklar daha sonra bir kapakla kapatıldı ve 37ºC'de aerobik inkübatörde tutuldu. Negatif kontrol grubuna (n=10) %0.05 Tween 80 ile 10 µL Steril PBS uygulandı.

    Larvaların canlılığı, vücut görünümünün (kahverengi-koyu kahverengi renk) görsel olarak incelenmesi ve vücut hareketinin olmaması ile izlendi. Deney iki kez tekrarlandı.

    İstatistiksel analiz - İstatistiksel analiz, Statistical Package for Social Sciences (SPSS) sürüm 16 kullanılarak gerçekleştirildi. Üçten fazla veri setinin çoklu ortalamaları, tek yönlü varyans analizi (ANOVA) ve iki yönlü ANOVA kullanılarak karşılaştırıldı. Anlamlılık düzeyi %5 olarak alınmıştır (p < 0.05).

    Git: SONUÇLAR


    Kimyasal bileşim - Tanımlanmış ve karakterize edilmiş kimyasal bileşenler ve bunların göreceli bolluğu,Tablo I. En bol bulunan aktif bileşik Eugenol'dür (%77.22). Benzil benzoat (%4,53), Trans caryophyllene (%3.39), Asetil öjenol (%2.75) ve Linalool (%2.11), spektrumlar (NIST) arasında >%95 benzerlik ile küçük bileşenler olarak bulundu (Tablo I). TABLO I

    Gaz kromatografisi-kütle spektrometrisi (GC-MS) ile tespit edilen Cinnamomum verum yaprağı esansiyel yağının (EO) kimyasal bileşenleri ve nispi bolluğu
    Tutma süresi (dk) Birleştirmek % Bolluk
    21.41 öjenol 77.22
    36.65 Benzil benzoat 4.53
    23.67 trans karyofillen 3.39
    28.03 asetil öjenol 2.75
    10.56 Linalol 2.11
    17.45 Trans-Sinnamaldehit 1.69
    24.71 Asetik asit sinnamil ester 1.49

    mikrofon -Tablo IIC. verum EO ve pozitif kontrol klorheksidin diglukonata karşılık gelen MIC değerlerini temsil eder . Hem C. verum hem de klorheksidin diglukonat, planktonik C. albicans (ATCC MYA-2876) ve C. dubliniensis (ATCC MYA-646) üzerinde benzer bir etkinlik sergiledi . C tropikalis (ATCC 750), C. verum yaprak yağına kıyasla klorheksidin diglukonat için daha duyarlıydı . TABLO II

    Candida spp'nin minimum inhibitör konsantrasyonu (MIC) . Deney, üç ayrı deney ile üç kopya halinde yapıldı. Pozitif kontrol olarak klorheksidin diglukonat kullanıldı
    organizma Tarçın verum yağı mg/mL Klorheksidin diglukonat mg/mL
    1 C. albicans (ATCC 5314) 1.0 1.0
    2 C. tropikalis (ATCC 750) 1.0 0,5
    3 C. dubliniensis (ATCC MYA-646) 1.0 1.0

    İlk yapışma üzerindeki etki - C. verum yaprağı yağının Candida'nın polistiren yüzeylere yapışması üzerindeki etkisini belirlemek için mikrotitre plaka XTT yönteminin sonuçları şu şekilde gösterilmiştir:1.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf1.jpg
    1:
    XTT metabolik aktivitesi azalma yüzdesi Candida albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis farklı konsantrasyonlarının varlığında (ATCC MYA-646) tarçın verum (CV) yaprağı yağı ve klorheksidin diglükonat (CHL). Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder.


    Elde edilen verilere göre, C. verum yaprak yağı, negatif kontrole kıyasla tüm test suşlarının polistiren yüzeye yapışmasını etkili bir şekilde azaltır. C. albicans , 1.0 mg/mL konsantrasyonla yapışmada %50 azalma sağlarken, C. tropikalis ve C. dubliniensis , sırasıyla > 2.0 mg/mL ve 0.34 mg/mL yağ konsantrasyonları ile yapışmada %50 azalma göstermiştir. Klorheksidin diglükonat yapışma% 50 azalma sergilemiştir C. albicans , C. tropicalis ve C dubliniensis'in sırasıyla 1.06 mg / mL, 0.72 mg / ml ve 1.32 mg / ml konsantrasyonlar ile (Tablo III). TABLO III

    Minimum konsantrasyonları tarçın verum yaprak uçucu yağ (EO) ve klorheksidin diglükonat (CHL) yapışmasını azaltmak için gerekli olan Candida albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis ile (ATCC MYA-646) %50
    c. albicans C. tropikal C. dubliniensis
    C. verum CHL C. verum CHL C. verum CHL
    Konsantrasyon (mg/mL) 1.0 1.06 > 2.0 0,72 0,2 1.32

    C. verum yaprağı yağının germ tüpü oluşumuna etkisi -İncir. 26 saatlik deney süresi boyunca 0.25, 0.5 ve 1.0 mg/mL C. verum yaprağı yağı ve klorheksidin diglukonat varlığında germ tüpü oluşturan hücrelerin yüzdesini gösterir .
    Resim, çizim vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf2.jpg
    İncir. 2:
    (A) Candida albicans (ATCC MYA-2876) ve (B) C. dubliniensis (ATCC MYA-646)'nın 0.25, 0.5 ve 1.0 mg/mL Cinnamomum verum yaprağı yağı ve klorheksidin diglukonat ile 6 saatlik test süresi içinde mikrop tüpü oluşum yüzdesi 2 saat aralıklarla. 0 mg/mL konsantrasyon, negatif kontrolü gösterir. Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder.


    Elde edilen verilere göre, hem C. verum yaprak yağı hem de klorheksidin diglukonat, test edilen tüm konsantrasyonlarda C. albicans ve C. dubliniensis'in germ tüpü oluşumunu önemli ölçüde azalttı (p < 0.05). 1.0 mg/mL (MIC) konsantrasyonunda hem C. verum yaprağı yağı hem de klorheksidin diglukonat , deney süresi (6 saat) boyunca her iki Candida türünün germ tüpü oluşumunu tamamen engelledi .

    Biyofilm oluşturmanın minimum biyofilm önleyici konsantrasyonu - Bu deneyde, biyofilm oluşumunu %50 (negatif kontrole kıyasla) engellemek için gereken minimum C. verum yaprağı yağı konsantrasyonu belirlendi. Uçucu yağ varlığında oluşan biyofilmlerin biyokütlesi/canlılığı, XTT canlılık tahlili kullanılarak belirlendi.Şekil 3 negatif kontrole kıyasla biyofilm oluşturmanın XTT metabolik aktivitesinin yüzde azalmasını gösterdi.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf3.jpg
    Şekil 3:
    XTT metabolik aktivitesi azalma yüzdesi Candida albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis (ATCC MYA-646), farklı konsantrasyonlarda varlığı ile oluşturan biyofilm tarçın verum (CV) yaprağı yağı ve klorheksidin diglukonat (CHL). Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder. Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder.


    Elde edilen verilere göre biyofilm oluşumunu %50 azaltmak için gereken konsantrasyonlar aşağıdaki gibidir (Tablo IV). TABLO IV

    En az biyofilm inhibe edici konsantrasyonlar (MBIC 50 arasında biyofilm oluşturulması için) Candida albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis (ATCC MYA-646)
    c. albicans C. tropikal C. dubliniensis
    tarçın çiçeği CHL C. verum CHL C. verum CHL
    MBIC 50 (mg / mL) 0.15 0.05 0.35 0.08 0,2 0.025
    CHL: klorheksidin diglukonat.


    MTC - Candida hücrelerini öldürerek biyofilm oluşumunu tamamen önlemek için gereken minimum C. verum yaprağı yağı konsantrasyonu, CFU testi kullanılarak belirlendi.4farklı konsantrasyonlarda C. verum yaprağı yağı ve CFU testi ile belirlenen klorheksidin diglukonatın mevcudiyeti ile biyofilm oluşturma canlılığını temsil eder .Tablo V test suşlarının biyofilm oluşumunu tamamen önlemek için gereken minimum tedavi konsantrasyonunu temsil eder.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf4.jpg
    4:
    varlığında Candida albicans (CA) (ATCC MYA-2876), C. tropikalis (CT) (ATCC 750) ve C. dubliniensis (CD) (ATCC MYA-646) biyofilmlerinin log koloni oluşturan birim (CFU) değerleri . (A) Cinnamomum verum (CV) yaprak yağı ve (B) klorheksidin diglukonat (CHL)'nin farklı konsantrasyonları . Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder. TABLO V

    Candida albicans (ATCC MYA-2876), C. tropikalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) oluşturan biyofilmlerini (MTC) tamamen öldüren Cinnamomum verum yaprağı yağı ve klorheksidin diglukonat konsantrasyonları
    test suşu Konsantrasyon, oluşturan biyofilmleri öldürmeyi gerektirir (mg/mL)
    C.verum yağı klorheksidin diglukonat
    C. albicans (ATCC MYA-2876) 1.0 0.25
    C. tropikalis (ATCC 750) 1.0 0.125
    C. dubliniensis (ATCC MYA-646) 1.0 0.125
    1.0 mg / mL C verum , tüm test suşlarının oluşturulması biyofilm öldürmek C. albicans (ATCC MYA-2876), C tropicalis (ATCC 750) ve C dubliniensis (ATCC MYA-646). Klorheksidin diglukonat , C. verum yaprak yağına kıyasla düşük konsantrasyonlarda Candida türlerinin biyofilm oluşturmasını öldürür . İçin , C. albicans , klorheksidin diglükonat ile öldürme konsantrasyonu 0.25 mg / ml (dört kez düşük bu değere göre konsantrasyon C. verum yaprağı yağı) ile ve C. tropicalis ve C dubliniensis'in , öldürme konsantrasyonu 0.125 mg / ml ( Bu değere kıyasla sekiz kat daha az konsantrasyonC.verum ).


    Biyofilm oluşturmanın SEM'i - 0.5, 1.0 ve 2.0 mg/mL C. varlığında C. albicans (ATCC MYA-2876), C. tropikalis (ATCC 750) ve C. dubliniensis (ATCC MYA-646) biyofilm oluşturma üst yapısı . verum yaprağı yağı, klorheksidin diglukonat ve Flukonazol, SEM tarafından kalitatif olarak değerlendirildi (Şekil 5, ​,6,6, ​,77).
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf5.jpg
    Ayrı bir pencerede aç
    Şekil 5:
    0.5 mg/mL Cinnamomum verum yaprağı yağı (A ve D), 1.0 mg/mL C. verum yaprağı yağı (B ve E) varlığında biyofilm oluşturan Candida albicans'ın (ATCC MYA-2876) taramalı elektron mikroskobu (SEM) görüntüleri , 2 mg/mL C. verum yaprağı yağı (C ve F), 0,25 mg/mL klorheksidin diglukonat (G ve J) ve 0,008 mg/mL Flukonazol (H ve K). I ve L: negatif kontrol. Kırmızı daireler: tedavilerle hücre duvarı deformiteleri.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf6.jpg
    Ayrı bir pencerede aç
    Şekil 6:
    0.5 mg/mL Cinnamomum verum yaprağı yağı (A ve D), 1.0 mg/mL C. verum yaprağı yağı (B ve E), 2.0 varlığında biyofilm oluşturan Candida tropikalis'in (ATCC 750) taramalı elektron mikroskobu (SEM) görüntüleri mg/mL C. verum yaprağı yağı (C ve F), 0.125 mg/mL klorheksidin diglukonat (G ve J) ve 0.008 mg/mL Flukonazol (H ve K) I ve L: negatif kontrol. Kırmızı daire: tedavilerle hücre duvarı deformiteleri. Kırmızı düz ok: hücre içi bileşenlerin sızıntıları.
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf7.jpg
    Ayrı bir pencerede aç
    7:
    0.5 mg/mL Cinnamomum verum yaprağı yağı (A ve D), 1.0 mg/mL C. verum yaprağı yağı (B ve E) varlığında biyofilm oluşturan Candida dubliniensis'in (ATCC MYA-646) taramalı elektron mikroskobu (SEM) görüntüleri , 2mg/mL C. verum yaprağı yağı (C ve F), 0.125 mg/mL klorheksidin diglukonat (G ve J) ve 0.008 mg/mL Flukonazol (H ve K) I ve L: negatif kontrol. Kırmızı daire: tedavilerle hücre duvarı deformiteleri.
    Cinnamomum verum yaprağı yağı , hücre duvarına zarar vererek Candida hücresinin büzülmesine ve hücre içi materyallerin sızmasına neden olur. Bu etkiler konsantrasyona bağlıdır. 2 mg/mL C. verum yaprağı yağı ile maksimum hücre hasarı gözlendi . Ve C. verum yaprağı yağı, biyofilm gelişimini ve biyofilm hücre yoğunluğunu azaltmıştır.


    Zaman atlamalı mikroskop kullanılarak biyofilm ilerleme analizi -Şekil 8AC, C. albicans'ın (ATCC MYA-2876) oluşan biyofilmlerinin zaman atlamalı mikroskobik görüntülerini gösterir ; C dubliniensis (ATCC MYA-646) ve C tropicalis uçucu yağ tedavisiz (ATCC 750), 0.5 mg / mL, 1.0 mg / ml ve 2.0 mg / ml C. verum 24 saat bir süre için yaprağı yağı tedavisi.
    Resim, çizim vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf8.jpg
    Ayrı bir pencerede aç
    8:
    (A) Candida albicans'ın (ATCC MYA-2876) gelişen biyofilmlerinin Zaman Atlamalı görüntüleri . Her sütun, Cinnamomum verum yaprağı yağı tedavisinin konsantrasyonunu temsil eder . (B) biyofilm geliştirme zaman ihmaller görüntü C. tropicalis (ATCC 750). Her sütun, C. verum yaprağı yağı muamelesinin konsantrasyonunu temsil eder . (C) C. dubliniensis'in (ATCC MYA-646) gelişen biyofilmlerinin Zaman Atlamalı görüntüleri . Her sütun, C. verum yaprağı yağı muamelesinin konsantrasyonunu temsil eder .
    İşlenmemiş (negatif) kontrol biyofilminin ilerlemesi, gözlem süresi boyunca aşırı biyofilm gelişimini gösterir. 0,5 mg/mL C. verum yaprağı konsantrasyonu Candida spp.'nin biyofilm gelişiminin gecikmesine neden olmuştur . 1.0 mg / ml ve 2.0 mg / ml C. verum yaprağı yağı tamamen inhibe C tropicalis ve C dubliniensis hücresi proliferasyonu ve 0 h biyofilm gelişimi.

    1.0 mg/mL C. verum yaprağı yağı ile C. albicans , 8 saate kadar hafif hücre proliferasyonu sergilerken, 2.0 mg/mL biyofilm gelişimini tamamen inhibe etti.


    İn-vivo C. verum yaprağı yağı (G. mellonella larvaları) toksisitesi - in vivo toksikliği C verum yaprak EO ile değerlendirildi in vivo G. Mellonella EO farklı konsantrasyonları ile işlemden sonra larva modeli. Muamele edilen larvaların %100 hayatta kaldığı, test edilen tüm konsantrasyonlarda (0.5, 1.0, 2.0, 16.0, 32.0, 64.0, 128.0, 250.0, 500.0, 1000.0 mg/mL) gözlemlendi, bu da tüm deney süresi boyunca (5 gün) deneysel modelde C. verum yaprağı EO toksisitesi (Şekil 9).
    Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı 1678-8060-mioc-115-e200349-gf9.jpg
    Şekil 9:
    Beş günlük deney süresi boyunca Cinnamomum verum yaprağı yağının uygulanmasından sonra Galleria mellonella larvalarının hayatta kalma oranı . Larvalara steril fosfat tamponlu salin (PBS) uygulanarak kontrol eğrisi elde edildi.


    Git: TARTIŞMA


    Candida spp. konakçı dokularda başarılı bir şekilde kolonize olmaya katkıda bulunan birçok virülent faktör gösterir. Konak yüzeylere yapışma (biyofilm oluşumunun ilk basamağı), germ tüpü oluşumu, biyofilm oluşumu, proteinazların ve diğer hidrolitik enzimlerin salgılanması ve aldehit üretimi bunlardan bazılarıdır. 30 Fitomedikal terapötikler, antimikrobiyal direncin yüksek oranda ortaya çıkması ve mikrobiyal patojenlerin artan virülansı nedeniyle modern dünyada daha popüler hale geliyor. 21 Öte yandan, kolay erişim, konakçı için toksisite olmaması, yüksek etkinlik ve maliyet etkinliği, antimikrobiyal doğal ürünlerin terapötik alternatifler olarak yaygın şekilde kullanılmasına katkıda bulunur. 21 Bu çalışma, bu tür bitki kaynaklı antimikrobiyal ajan C. verum yaprak EO'nun en yaygın insan mantar patojeni Candida spp.'nin virülans mekanizmalarını kontrol etme üzerindeki etkinliğini değerlendirmek için yapılmıştır . Ayrıca in-vivo laboratuvar deney modeli olan G. melonella larvaları üzerindeki toksisite de değerlendirilmiştir.

    Konak yüzeylere veya abiyotik yüzeylere yapışma, mikrobiyal patojenlerin kolonizasyonunun ilk adımıdır. EO, 1.0 mg / mL konsantrasyonda yapışmasını düşük C. albicans ,> 2.0 mg / ml ve 0.34 mg / petrol ml konsantrasyonları düşük ise,% 50 C tropicalis ve C. dubliniensis sırasıyla% 50 yapışma. Referans mantar karşıtı klorheksidin diglükonat sergilenen yapışma azalma% 50 C. albicans , C. tropicalis ve C dubliniensis'in 1.06 mg / mL, 0.72 mg / mL ve 1.32 mg / mL konsantrasyonlar mevcut olabilir. Daha da önemlisi, daha düşük konsantrasyonlarda C. albicans ve C. dubliniensis'in yapışmasında %50 azalma sağlanmıştır.C. verum yaprak yağı, klorheksidin diglukonat kontrolüne kıyasla bu iki suşun yapışmasını önlemede C. verum EO'nun daha yüksek etkinliğini gösterir . Elde edilen verilere göre, 2.0 mg/mL klorheksidin diglukonat, tüm test suşlarının yapışmasını tamamen inhibe eder, ancak gözlem, test süresi (2 saat) sırasında organizmaların tamamen öldürülmesine bağlı olabilir. Konak yüzeylere yapışma, biyofilm oluşumunun ana virülans faktörlerinden ve ilk adımlarından biri olduğundan, C. verum EO'nun Candida spp. üzerindeki yapışma önleyici özellikleri . bir antimikrobiyal ajan olarak uygunluğuna katkıda bulunur.

    Germ tüpü oluşumu, C. albicans ve C. dubliniensis'in konakçı dokuları istila ederek besinlerin emilimini sağlayan bir diğer önemli virülent faktördür . Etkisi C VERUM alt MIC (0.25 ve 0.5 mg / ml), her ikisi de C. verum yaprağı yağı ve klorheksidin diglükonat miktarı hem mikrop tüp oluşumunu azaltmak C. albicans ve C dubliniensis'in MIC (1.0 mg / ml), oysa test suşlarının germ tüpü oluşumunu tamamen inhibe eder. Zamanla ( C. albicans için , 2 saat sonra ve C. dubliniensis için, 4 saat sonra) üretilen germ tüpleri yalancı hif ve hifaya dönüştüğü için kontrol grubu dahil tüm gruplarda germ tüpü oluşumu kademeli olarak azaldı. C. verum yaprağı EO'nun Candida spp.'nin adezyonu ve germ tüpü oluşumu üzerindeki etkisine dair yayınlanmış hiçbir bilimsel kanıt bulunmamaktadır . Mevcut çalışma, Tarçın yaprağı yağının Candida spp'nin öldürücü faktörlerini kontrol etme üzerindeki etkinliğini bulmak için tasarlanmıştır . mevcut verilerin bu boşluğunu doldurmak için. Yapışma ve germ tüpü oluşumu, Candida'nın enfeksiyona neden olma yeteneğinin temel özellikleridir ve bu nedenle, bu faktörlere müdahale eden antimikrobiyal maddeler, potansiyel anti- Candida ajanları olarak kabul edilir . Bu nedenle C. verumyaprak EO, Candida enfeksiyonlarına karşı terapötik bir alternatif olarak geliştirilebilir .

    Biyofilm, hücrelerden ve çevreden türetilen hücre dışı bir matrise gömülü yüzeye bağlı mikrobiyal topluluklardır. 21 Biyofilmler, bu dış stresleri nötralize etmek için çeşitli mekanizmalar sergilediklerinden, biyofilmler planktonik muadillerine kıyasla fiziksel ve kimyasal streslere karşı daha dirençlidir. Hücre dışı biyofilm matrisi, antimikrobiyal ajanların biyofilme difüzyonu için fiziksel veya kimyasal bir bariyer görevi görür. Ayrıca, besinlerin sınırlı mevcudiyeti ile biyofilm topluluğu, üstel büyümeden yavaş büyüme veya hiç büyüme durumuna doğru kayar. Yukarıdaki faktörlerin tümü ve bir biyofilm fenotipinin uyarılması ve çekirdek algılama, bir biyofilmin antimikrobiyal ajanlarına karşı yüksek dirence katkıda bulunur. 31 , 32 Biyofilmlerin mevcut antimikrobiyal stratejilere direnci giderek yaygınlaştığından, özellikle patojenin virülansını etkin bir şekilde kontrol ederek yeni, toksik olmayan, ucuz ve etkili tedavi seçenekleri icat etmek için daha fazla çalışma yapılmalıdır. Mevcut çalışmada, potansiyel bir fitomedikal ajan olarak C. verum yaprağı EO'nun etkinliği, Candida biyofilmlerinin oluşturulmasında değerlendirilmiştir . C. verum EO, C. albicans (ATCC MYA-2876), C. tropikalis (ATCC 750) ve C. dubliniensis'in biyofilmlerinin oluşumunda potansiyel bir antibiyofilm etkisi sergiledi .(ATCC MYA-646) test suşları. Biyofilm gelişimini %50 azaltmak için gereken konsantrasyonlar (negatif kontrol ile karşılaştırıldığında), üç test suşu için sırasıyla 0.15, 0.35 ve 0.2 mg/mL idi. Ve MTC (biyofilm gelişimini tamamen durdurmak için gereken EO konsantrasyonları) tüm test suşları için 1.0 mg/mL idi. Önemli olarak, bu MTC değerleri, biyofilmlerin planktonik muadilinden daha dirençli mikrobiyal topluluklar olarak kabul edilmesine rağmen , C. verum EO'nun biyofilm oluşturmanın yüksek öldürme potansiyelini gösteren test suşlarının MIC ve MFC değerlerinden düşüktür. Bu veriler, C. verum yağının, Candida biyofilmlerinin normal oluşum sürecini kesintiye uğratma üzerindeki potansiyel etkisini göstermektedir .

    C. verum yaprak yağının kimyasal stresi altında biyofilm ilerlemesi hızlandırılmış mikroskopla görüntülendi ve bu deneyden elde edilen sonuçlar yukarıdaki gözlemi doğruluyor. 2 x MTC (2 mg/mL) C. verum EO, 0. saatten itibaren tüm test suşlarının biyofilm gelişimini tamamen inhibe ederken, 0. saatten itibaren MTC (1 mg/mL) ile ilerleyen C. albicans'ta hafif hücresel proliferasyon ve biyofilm gelişimi gözlemlendi. 8 saate kadar. 8 saat sonra, biyofilm geliştiren C. albicans'ta görünür bir biyofilm gelişimi kaydedilmedi . C. tropikalis ve C. dubliniensis biyofilm gelişimi, MTC tarafından 0. saatte tamamen inhibe edilmiştir. Sub-MTC (0,5 mg/mL), test edilen tüm biyofilm gelişiminin gecikmesine neden olurCandida suşları. Bu sonuçlar, biyofilm önleyici bir strateji olarak C. verum yaprak EO'nun olası etkin kullanımını göstermektedir . Ayrıca, SEM ve zaman atlamalı mikroskopiden elde edilen veriler, EO'nun Candida biyofilminin ilerlemesi üzerindeki etkisinin doza bağımlı olduğunu ortaya koymaktadır .

    C. verum yaprak EO varlığı ile geliştirilen Candida biyofilmlerinin yapısını anlamak için SEM görüntüleri alınmıştır . Test suşlarının tüm biyofilmleri, tarçın yaprağı yağı tedavisi ile azaltılmış hücre yoğunluğu, hücre duvarı hasarları, hücre duvarı deformiteleri ve hücre içi materyal sızıntıları sergiledi. Daha da önemlisi, SEM görüntüleri, C. verum yaprağı esansiyel yağının etkilerinin doza bağımlı doğasını doğrulamaktadır . Flukonazol, azol grubuna ait bilinen bir antifungal ajandır ve lanosterolün ergosterole dönüşmesini engelleyerek fungal sterol, ergosterol sentezini engeller.
    33 Öte yandan klorheksidin diglukonat, antibakteriyel ağız gargarası olarak kullanılan bir biguaniddir. Morfoloji hücrelerini değiştirir ve mikroorganizmaların hücre duvarına zarar verir ve hücre içi bileşenleri serbest bırakır. Oral kandidiyaz için iyi bilinen bir terapötik antifungal ajan olarak önerilmiştir. 34 , 35 , her iki antimikrobik maddelerin yana üzerinde bir etkiye sahip Candida hücre duvarı oluşturan ince yapısı , Candida ile biyofilm 0.25 mg / ml klorheksidin diglükonat için ( C. albicans ), 0.125 mg / ml klorheksidin diglükonat için ( C. tropicalis ve C dubliniensis'in ) ve 0,008 mg/mL Flukonazol ( in vitro olarak önerilen maksimumtahlil konsantrasyonu, CLSI) de görselleştirildi. Benzer gözlemler, klorheksidin diglukonat ve 0.008 mg/mL Flukonazolün MTC'sine maruz bırakıldığında elde edilmiştir. Flukonazolün maruziyet sonrası tepkisinin yoğunluğu, düşük konsantrasyon nedeniyle minimal olmuştur.

    Klorheksidin diglukonat düşünüldüğünde, C. verum yaprak yağı ile benzer etki göstermiştir ( Candida hücrelerinin hücre duvarlarına zarar verir ve sitoplazmik sızıntılara neden olur). Bundan başka, SEM gözlemlerine göre, klorheksidin diglükonat psödo hifler oluşumu azalmıştır C. tropicalis , negatif kontrol ile karşılaştırıldığında. SEM kullanılarak analiz edilen biyofilmlerin hiçbirinde biyofilmlerin karakteristiği olan ekstraselüler polimerik matris gözlenmemiştir, çünkü ön işlemler ve ekipmanın elektron ışını matris tahribatına neden olabilir.

    C. verum yağının Candida biyofilm oluşumu üzerindeki etkisi iyi çalışılmamış olsa da, çeşitli bilim adamları tarafından Tarçın yağının farklı bakteri türlerinin virülansı ve biyofilm tükenmesi üzerindeki etkinliğini değerlendirmek için birkaç çalışma yapılmıştır. Kalia et al. 2015 yılında 36 , biyofilm oluşumunun inhibisyonunu ve proteolitik enzim üretimi ve kümelenme aktivitesi gibi diğer çekirdek algılama (QS) ile ilişkili virülans faktörlerini ve etkili biyofilm azaltma ve QS üzerindeki antagonist etkiyi ölçerek tarçın yağının Pseudomonas aeruginosa'ya karşı anti-nispeten algılama aktivitesini inceledi. . Ayrıca, 2019'da Erfan ve Marouf, solunum yolu bakteriyel patojenlerinin ( Staphylococcus aureus) virülans genlerinin aşağı regülasyonunu gözlemledi., E. coli , Avibacterium paragallinarum ve Pasteurella multocida vb.) tarçın yağı ile. Antibiyotiğe dirençli bakteriyel enfeksiyonların kontrolü için rutin antibiyotikler yerine tarçın yağının olası kullanımını önerdiler. 37 Zhang ve ark. 2020 ve Kim ve ark. 2014'te 38 , 39 , C. verum kabuğu yağının mikrobiyal toksinlerin inhibisyonu, biyofilm gelişimini kesintiye uğratması ve patojenik bakteri türlerinin çekirdek algılaması dahil olmak üzere birkaç anti-virülans mekanizması tanımladı . Ancak C. verum yaprağı yağının mantar öldürücülüğü üzerindeki anti-virülans özellikleri geniş çapta çalışılmamıştır.

    Yeni bir bitkisel terapötik maddenin icadı söz konusu olduğunda, klinik uygulamasından önce doğal bir ürünün toksikolojik değerlendirmesi önemli bir husustur. Mevcut çalışma , G. mellonella deney modelini kullanarak C. verum EO'nun in-vivo toksisitesini belirlemektedir . 0,5 ila 1000 mg/mL EO arasında değişen tüm test konsantrasyonları ile G. mellonella larvaları ile %100 hayatta kalma gözlemlendi . Bu , deney modelinde C. verum yaprağı yağının toksik olmadığını gösterir . 1000 mg/mL, C. verum yaprağı EO'nun saf konsantrasyonu (seyreltilmemiş) olduğundan, saf çözelti dahil tüm seyreltmeler toksik olmayan olarak kabul edilebilir. Her ne kadar önceki in-vivoHayvan modellerinde ilgili yapılan çalışmalarda, tarçın kabuğu yağı konsantrasyonu önemli ölçüde yüksek bir terapötik aralık olan önemli bir toksisite eksikliği sermiştir 22 in vivo laboratuar hayvan modelleri üzerinde tarçın yaprağı yağı toksikliği çalışılmamıştır.

    C. verum yaprağı EO'nun kimyasal analizinin sonuçları, öjenolün en bol kimyasal bileşeni olduğunu (%77.22), diğer kimyasal bileşiklerin daha küçük konsantrasyonlarda ortaya çıktığını gösteren önceki çalışmaların bulgularıyla uyumludur. 40

    Kandidiyaz ile ilişkili yüksek oluşum ve ölüm oranları, kandidiyazis tedavisinde yeni terapötik yaklaşımların getirilmesinin acil gerekliliğini vurgulamaktadır. Birden fazla araştırma grubu tarafından yürütülen çeşitli çalışmalar, kandidiyazın patogenezi hakkında önemli bilgiler sağlamıştır, 15 , 41 ve bu bilgi, bulgularının Candida ve diğer enfeksiyonlardan muzdarip hastalara doğrudan fayda sağlayabilecek tedavi stratejilerine dönüştürülmesi için bir başlangıç ​​noktası oluşturmalıdır . Bunlar arasında daha etkili ve en erken seçenek, Candida enfeksiyonlarının kontrolü ve tedavisi için yeni anti-virülans yaklaşımlarının icadıdır . 42 Germ tüpü oluşumu, konak yüzeylere yapışma ve biyofilm oluşumu kandidiyazis sırasında başlıca virülans faktörlerini oluşturduğundan, bunlar, bu tür alternatif anti-virülans stratejilerinin yeniliği için klinik olarak kullanılmamış bir hedefi temsil eder. Bu çalışmada, doğal bir ürün olan C. verum yaprağı EO'nun toksik olmayan, Candida spp. Her iki kullanılarak belirlenmiştir in vitro ve in vivo deney serisi.

    Bir dizi in vitro ve in vivo çalışmada Candida enfeksiyonlarının tedavisi için bitki kaynaklı doğal ürünler kullanılmış olsa da, bu tedavilerin antifungal etkisinin veya Candidal fizyolojisi üzerindeki etkisinin kesin mekanizması net olarak anlaşılmamıştır. C. verum Bu çalışmada kullanılan yaprak EO hastalık oluşturma etkisinin müdahale etmek suretiyle kandidiyazis tedavisinde, toksik olmayan terapötik uygulama için potansiyeli olan bitkisel bir üründür Candida . Bununla birlikte, C. verum'a dayalı bir mantar önleyici madde geliştirmek için , in-vivo toksisite araştırmaları ve klinik deneylerin yanı sıra gen düzenlemesi üzerine moleküler çalışmaları içeren daha ileri deneyler önerilir. yaprak EO.

    Sonuç olarak, bu çalışma, Candida spp.'nin üç temel virülans faktörü olan adezyon, germ tüpü oluşumu ve biyofilm oluşumuna karşı bir anti-virülans yaklaşımı olarak C. verum yaprak EO'nun yüksek etkinliğine dair kanıt sağlar . C. verum yapraklarından ekstrakte edilen EO , ana aktif bileşeni olarak öjenol içerir ve G. mellonella larvalarına karşı toksik değildir .

    Git: TEŞEKKÜRLER


    Destekleri için Brezilya, Campinas Üniversitesi, Piracicaba Dişhekimliği Okulu, Ağız Tanı Departmanı, Mikrobiyoloji ve İmmünoloji alanındaki tüm akademik ve akademik olmayan personele.

    Git: Dipnotlar


    Mali destek: CNPq (Hibe No. 132718/2018-9).


    Git: REFERANSLAR

    1. Kojic EM, Darouiche RO. Tıbbi cihazların Candida enfeksiyonları. Clin Microbiol Rev. 2004; 17 (2):255–267. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    2. Achkar JM, Patates Kızartması M.Ö. Genitoüriner sistemin Candida enfeksiyonları. Clin Microbiol Rev. 2010; 23 (2):253–273. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    3. Douglas LJ. Candida enfeksiyonlarında biyofilmlerin tıbbi önemi. Rev Iberoam Micol. 2002; 19 :139–143. [ PubMed ] [ Google Akademik ]
    4. Oranlar FC. Candida enfeksiyonlarına genel bir bakış. Kritik Rev Mikrobiyol. 1987; 15 (1):15–15. [ PubMed ] [ Google Akademik ]
    5. Sardi JCO, Scorzoni L, Bernardi T, Fusco-Almeida AM, Mendes Giannini MJS. Candida türlerinin güncel epidemiyolojisi, patojenitesi, biyofilm oluşumu, doğal antifungal ürünler ve yeni tedavi seçenekleri. J Med Mikrobiyol. 2013; 62 (1):10–24. [ PubMed ] [ Google Akademik ]
    6. Marsh PD, Martin MV. Ağız mikrobiyolojisi. 4. Oxford: Wright; 1999. [ Google Akademik ]
    7. Asmundsdóttir LR, Erlendsdóttir H, Agnarsson BA, Gottfredsson M. Candida dubliniensis ve Candida albicans'ın virülansında suş varyasyonunun önemi, invaziv kandidiyazisin kör bir histopatolojik çalışmasının sonuçları. Clin Mikrobiyol Enfeksiyonu. 2009; 15 (6):576–585. [ PubMed ] [ Google Akademik ]
    8. Samaranayake L, Fidel P, Naglik JR, Sweet S, Teanpaisan R, Coogan MM. HIV enfeksiyonu ile ilişkili mantar enfeksiyonları. Oral Dis. 2002; 8 :151–160. [ PubMed ] [ Google Akademik ]
    9. Sant'Ana PL.Milan EP.Martinez R.Queiroz-Telles F.Ferreira MS.Alcântara AP Aids hastalarından izole edilen oral Candida türlerinin çok merkezli Brezilya çalışması. Mem Inst Oswaldo Cruz. 2002; 97 (2):253–257. [ PubMed ] [ Google Akademik ]
    10. Arendrup MC. İnvaziv kandidiyazis epidemiyolojisi. Curr Opin Kritik Bakım. 2010; 16 (5):445–452. [ PubMed ] [ Google Akademik ]
    11. Bongomin F, Gago S, Oladele RO, Denning DW. Mantar hastalıklarının küresel ve çok uluslu yaygınlığı - kesinliği tahmin edin. J Mantarları (Basel) 2017; 3 :E57. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    12. Pemán J, Zaragoza R. Kritik hastada invaziv kandidiyazisin erken teşhisine doğru. Rev Iberoam Micol. 2012; 29 (2):71–75. [ PubMed ] [ Google Akademik ]
    13. Tsang PW, Bandara HMHN, Fong W. Purpurin, Candida albicans biyofilm oluşumunu ve hif gelişimini baskılar. PLoS Bir. 2012; 7 (11):1–8. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    14. Raju SB, Rajappa S. Ağız boşluğundan Candida'nın izolasyonu ve tanımlanması. ISRN Dent. 2011; 2011 :487921–487921. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    15. Mayer FL, Wilson D, Hube B. Candida albicans patojenite mekanizmaları. Virülans. 2013; 4 (2):119–128. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    16. Luo S, Skerka C, Kurzai O, Zipfel PF. İnsan patojenik mantar Candida albicans'ın tamamlayıcı ve doğuştan gelen bağışıklıktan kaçınma stratejileri. Mol İmmünol. 2013; 56 (3):161–169. [ PubMed ] [ Google Akademik ]
    17. Coutinho HDM. Candida spp'nin virülansını etkileyen faktörler. Batı Hint Med J. 2009; 58 (2):160-163. [ PubMed ] [ Google Akademik ]
    18. Romo JA, Zhang H, Cai H, Kadosh D, Koehler JR, Saville SP. Küresel transkriptomik analizi. Candida albicans, yeni bir filamentasyon inhibitörü ile tedaviye yanıt. mSphere. 2019; 4 :e00620–e00619. doi: 10.1128/mSphere.00620-19. [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Akademik ]
    19. Toda M, Williams SR, Berkow EL, Farley MM, Harrison LH, Bonner L. Kültür tarafından doğrulanmış kandidemi için nüfusa dayalı aktif gözetim - dört bölge, Amerika Birleşik Devletleri, 2012-2016. MMWR Gözetim Özeti. 2019; 68 :1–15. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    20. Maia F, Wijesinghe G, Oliveira T, Barbosa JP, de Feiria SNB, Boni GC. Phyllanthus niruri L (taş kırıcı), anti-insan hastalıklarına alternatif, antimikrobiyal ajan ve dirençli mikroorganizmalarla mücadelede uygulanabilirliği. Kısa Bir İnceleme. Braz J Nat Sci. 2020; 3 (2):342–342. [ Google Akademik ]
    21. Rao PV, Gan SH. Tarçın çok yönlü bir şifalı bitkidir. Kanıta Dayalı Comp Alter Med. 2014; 2014 :642942–642942. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    22. Ranasinghe P, Pigera S, Premakumara GS, Galappaththy P, Constantine GR, Katulanda P. "Gerçek" tarçının (Cinnamomum zeylanicum) tıbbi özellikleri sistematik bir derleme. BMC Tamamlayıcı Alter Med. 2013; 13 :275–275. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    23. Chamorro ER, Zambón SN, Morales WG, Sequeira AF, Velasco GA. Gaz kromatografisi ile uçucu yağların kimyasal bileşiminin incelenmesi. 2012. https://www.intechopen.com/books/gas-chromatography-in-plant-science-wine-technology-toxicology-and-some-special-applications/study-of-the-chemical-composition-of- uçucu yağlar-gaz-kromatografisi
    24. Wijesinghe GK. Gerçek Tarçın (Cinnamomum verum) yaprağı yağının in vitro Candida biyofilmlerine etkisi ve sitotoksik etkisi. Campinas: Campinas Eyalet Üniversitesi; 2019. [ Google Akademik ]
    25. Raut JS, Shinde RB, Chauhan NM, Karuppayil SM. Bitki kökenli terpenoidler, Candida albicans tarafından morfogenezi, yapışmayı ve biyofilm oluşumunu engeller. Biyolojik kirlilik. 2013; 29 :87-96. [ PubMed ] [ Google Akademik ]
    26. Pierce CG, Uppuluri P, Tristan AR, Wormley FL, Jr, Mowat E, Ramage G. Fungal biyofilmlerin oluşumu için basit ve tekrarlanabilir 96-yuvalı plaka bazlı bir yöntem ve antifungal duyarlılık testine uygulanması. Nat Protokol. 2008; 3 (9):1494–1500. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    27. Çekiç KA, Carson CF, Riley TV. Melaleuca alternifolia (çay ağacı) yağı, Candida albicans tarafından mikrop tüpü oluşumunu engeller. Med Mycol. 2000; 38 :355–362. [ PubMed ] [ Google Akademik ]
    28. Silva NCC, Fernandes A., Jr Tıbbi bitkilerin biyolojik özellikleri, antimikrobiyal aktivitelerinin gözden geçirilmesi. J Venom Anim Toksinleri, Trop Dis. 2010; 16 (3):402–413. [ Google Akademik ]
    29. Freitas-Fernandes FS, Cavalcanti YW, Ricomini AP, Filho, Silva WJ, Cury AADB, Bertolini M. Günlük enzimatik protez temizleyici kullanımının poliamid ve poli(metil metakrilat) reçineleri ve in vitro üzerinde oluşturulan Candida albicans biyofilmleri üzerindeki etkisi Araştırma. J Protez Dent. 2014; 112 (6):13491355-13491355. [ PubMed ] [ Google Akademik ]
    30. Calderone RA, Fonzi WA. Candida albicans'ın virülans faktörleri. Trendler Mikrobiyol. 2001; 9 (7):327–335. [ PubMed ] [ Google Akademik ]
    31. Simões M, Simões LC, Vieira MJ. Mevcut ve ortaya çıkan biyofilm kontrol stratejilerinin gözden geçirilmesi. LWT-Food Sci Tech. 2010; 43 :573–583. [ Google Akademik ]
    32. Mah TFC. O'Toole GA Antimikrobiyal ajanlara karşı biyofilm direnci mekanizmaları. Trendler Mikrobiyol. 2001; 9 (1):34–39. [ PubMed ] [ Google Akademik ]
    33. Richardson K, Cooper K, Marriott MS, Tarbit MH, Troke PF, Whittle PJ. Yeni bir mantar önleyici ajan olan Flukonazolün keşfi. Klinik Enfeksiyon Dis. 1990; 12 (Ek 3) [ PubMed ] [ Google Akademik ]
    34. Da Silva PMB, Acosta EJTR. de Rezende Pinto L.Graeff M.Spolidorio DMP.Almeida RS Klorheksidin glukonat ve sodyum hipoklorit işlemlerinden sonra ısı ile polimerize edilmiş akrilik reçine üzerindeki Candida albicans biyofilmlerinin mikroskobik analizi. Mikozlar. 2011; 54 (6):e712–e717. [ PubMed ] [ Google Akademik ]
    35. Bobichon H, Bouchet P. Klorheksidinin tomurcuklanan Candida albicans üzerindeki etkisi Tarama ve transmisyon elektron mikroskobik çalışması. mikopatoloji. 1987; 100 (1):27–35. [ PubMed ] [ Google Akademik ]
    36. Kalia M.Yadav VK.Singh PK.Sharma D.Pandey H.Narvi SS Tarçın yağının çekirdek algılama üzerindeki etkisi - Pseudomonas aeruginosa'da kontrollü virülans faktörleri ve biyofilm oluşumu. PLoS Bir. 2015; 10 (8):e0135495. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    37. Erfan A, Marouf S. Tarçın yağı, kanatlı solunum yolu bakteriyel ajanlarının virülans genlerini aşağı regüle eder ve in vitro bir bakış açısıyla önemli bakteri inhibisyonunu ortaya çıkarır. Veteriner Dünyası. 2019; 12 (11):1707-1715. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    38. Zhang D, Gan RY, Zhang JR, Farha AK, Li H, Zhu F. Baharat esansiyel yağlarının antivirülans özellikleri ve ilgili mekanizmaları kapsamlı bir inceleme. Compr Rev Gıda Bilimi Gıda Saf. 2020; 19 (3):1018–1055. [ Google Akademik ]
    39. Kim Y, Lee J, Kim S, Baek K, Lee J. Tarçın kabuğu yağı ve bileşenleri biyofilm oluşumunu ve toksin üretimini engeller. Int J Gıda Mikrobiol. 2015; 195 :30–39. [ PubMed ] [ Google Akademik ]
    40. Liyanage T, Madhujith T, Wijesinghe KGG. Gerçek tarçın (Cinnamomum verum Presl syn. C. zeylanicum Blum.) ve Sri Lanka'da yetişen beş yabani tarçın türünün uçucu yağındaki ana kimyasal bileşenler üzerinde karşılaştırmalı çalışma. Trop Tarım Arş. 2017; 28 (3):270–270. [ Google Akademik ]
    41. Romo JA, Pierce CG, Chaturvedi AK, Lazzell AL, McHardy SF, Saville SP. Yeni bir dizi küçük moleküllü inhibitörler aracılığıyla kandidiyaz için anti-virülans yaklaşımlarının geliştirilmesi. Candida albicans filamentasyonu. mBio. 2017; 8 (6):e01991–e01917. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
    42. Pierce CG, Lopez-Ribot JL. Kandidiyaz ilaç keşfi ve yeni ilaçların keşfedilmesi ve tanımlanması için virülansı hedefleyen yeni yaklaşımlar geliştirme. Uzman Opin İlaç Diskovu. 2013; 8 (9):1117–1126. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
  • #2
    <iframe width="640" height="390" src="https://www.youtube.com/embed/h0k4o07LWkY" frameborder="0" allowfullscreen></iframe>
    <iframe width="640" height="390" src="https://www.youtube.com/embed/Z6brgU2Vg8I" frameborder="0" allowfullscreen></iframe>

    TARÇIN


    Ağaç | 6-12m | 3-6 Aylar | Ça,Ho,Na | Kabuk, Yaprak ve Yağı

    Tarçın, Zimt, Cinnamomum verum PREDL.
    Darçın Syn: Cainnamomum zeylanicum BLUME
    Seylan tarçını

    Familyası: Defnegillerden, Lorbeerbaugewâchse, Lauraceae

    Drugları: Tarçın kabuğu; Cainnamomi cortex
    Tarçın yağı; Cainnamomi aetheroleum
    Tarçın kabuğu çay, tentür, eter yağı ve natürel ilaç yapımında, eter yağı ise aromaterapisinde kullanılır. Nadiren tarçın yaprakları ve yaprak yağı da kullanılabilir.

    Giriş: Defnegillerin bir alt grubuna ait olan Cinnumomumgillere (Tarçın-giller) dahil olup takriben 150 tür Tarçın çeşidi mevcuttur. Bunlardan en kalitelisi Seylan Tarçını hem ilaç hem çay hem de bahat olarak kullanılır. Bunun haricinde baharat olarak kullanılan ikinci derecede kaliteli Tarçınlar mevcuttur ve bunlar; Çin Tarçını; C.aromaticum NEES, Cava Tarçını; C.burmanii BLUMES ve Saygon Tarçını; C.loureirii NEES en önemlileridir. Tarçın binlerce yıldan beri başta Güneydoğu Asya ilkelerinde kullanılmaktadır ve Avrupa’da ancak 15.yy.dan sonra kullanılmaya başlanmıştır.

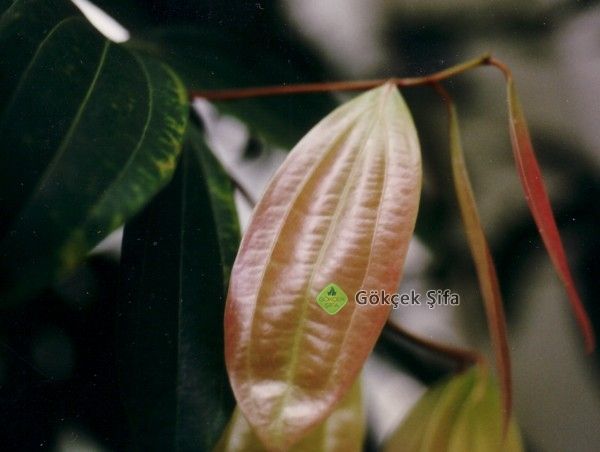
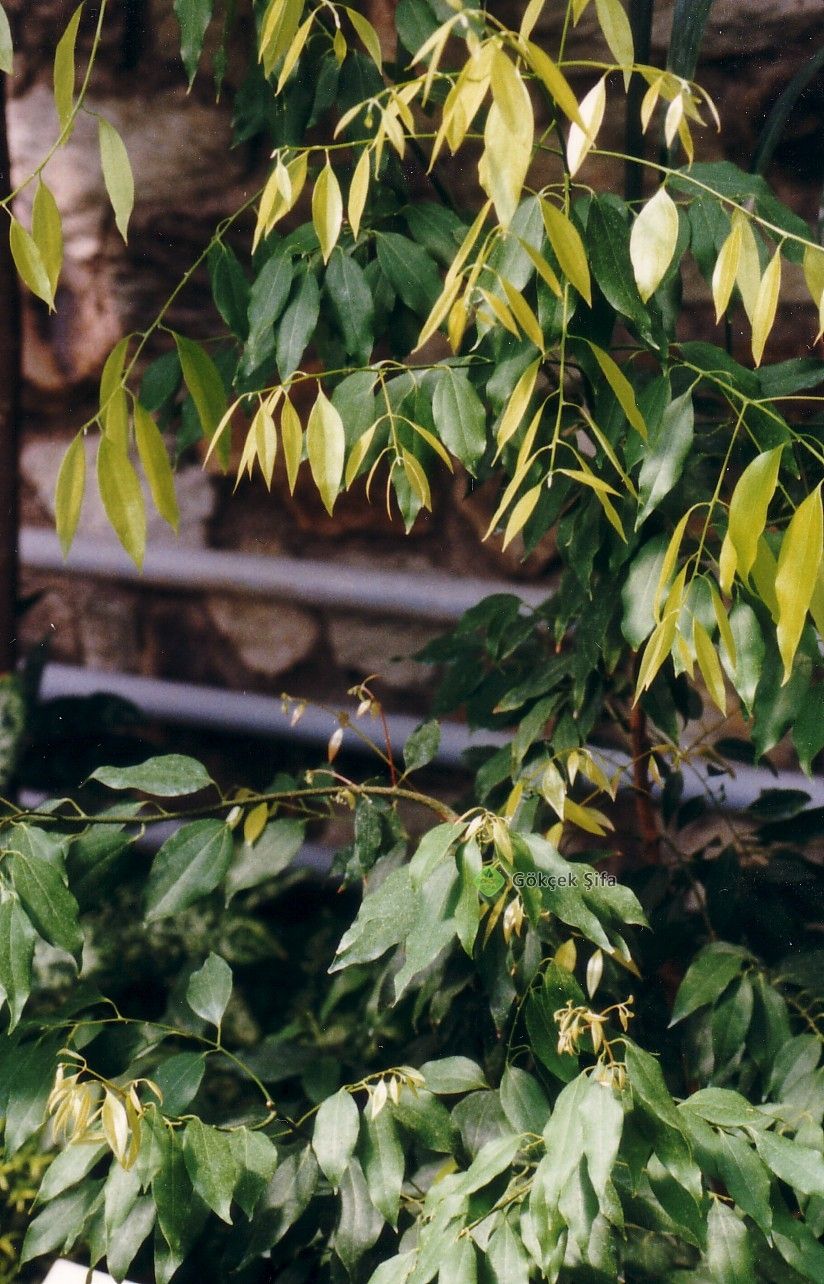
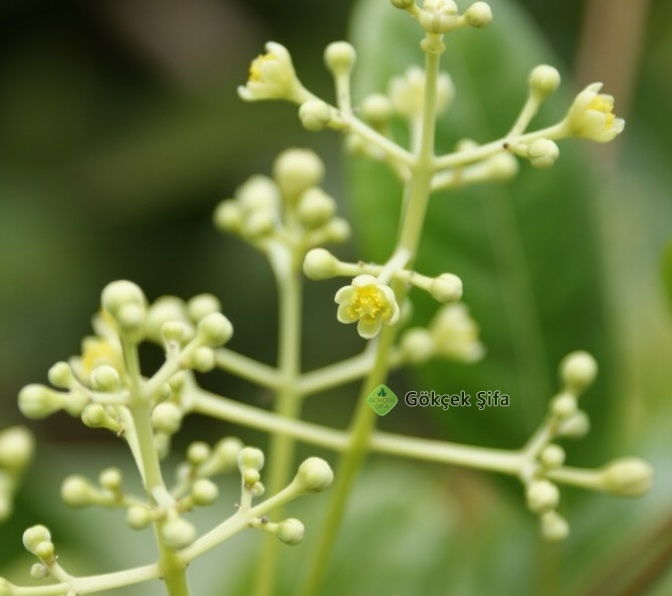
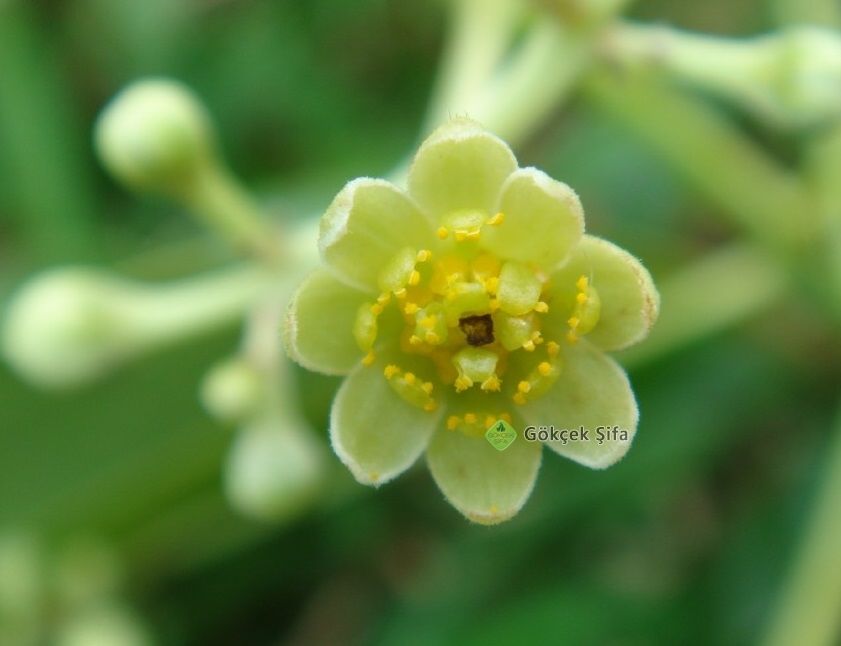
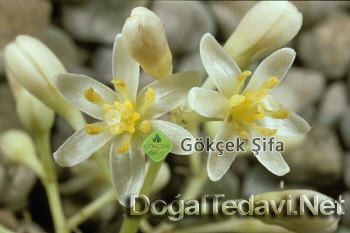
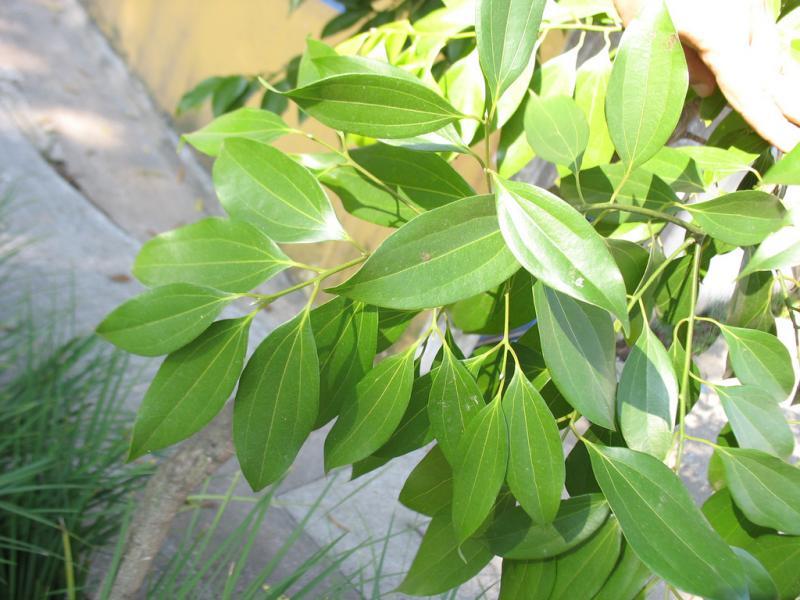
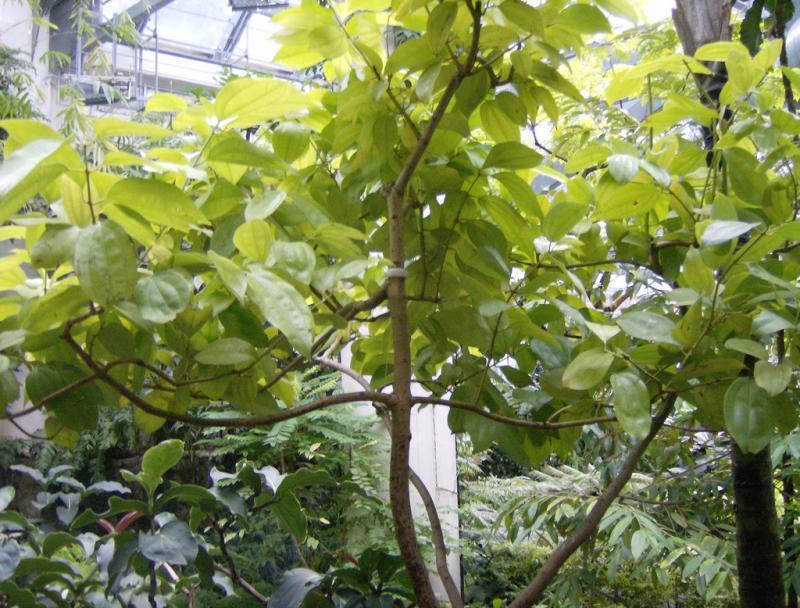
    Botanik: Tarçın 6-12cm boyunda ağaç olup geriden uzun silindir şeklinde bir gövde ve üstünde büyük bir kronu (taçı) vardır. Tarçın 2-3 yaşında iken gövdesi yerden 50cm yukarıdan kesilir ve böylece kökünden sayısız uzun şıvgınlar çıkar. Bu 2-3cm uzunluğundaki şıvgınların kabukları soyularak kurutulur. Çiçekleri ağacın tepesindeki dalların ucunda topluca bir arada bulunur ve çiçekleri oldukça küçük olup beyazımsı yeşil renklidir. Meyveleri 0,5cm çapında, yarısına kadar kaba yaprakları tarafından sarılmış ve yumurta şeklindedir. Yaprakları taze iken kırmızı, sonra kahverengimsi kırmızı ve olgunlaşınca yeşil renk alır. Yaprakları 7-15 cm uzunluğunda, 4-6cm eninde, oval veya yumurta şeklinde, kenarları bütün, üstü parlak ve koyu yeşil, altı ise mattır.

    Yetiştirilmesi: Tarçın tropik ülkelerde yetiştiğinden Türkiye’de ancak botanik bahçelerde yetiştirilebilir. Günümüzde başta Endonezya, Malezya, Madagaskar, Brezilya ve Jamaika’da kültür bitkisi olarak yetiştiril-mektedir.

    Hasat zamanı: 2-5yaşındaki Tarçın fidesinin gövdesi yerden 50cm yukarıdan kesilince bitkinin kütüğünden yetiştiği yöreye ve toprağa göre şıvgınlar çıkar. Bu şıvgınların kabukları soyulur. Kabukların dışındaki man-tarsı kabuk atılarak iç kabuklar iç içe geçirilerek kurumaya bırakılır. Seylan tarçının kabukları iç içe dizilmiş ve öylece kurutulmuştur. 0,5mm kalınlığında 15-25cm uzunluğunda açık kahverengimsi, narin ve hoş koku-ludur. Çin tarçını koyu kahverengimsi, tadı keskin, 1-3mm kalınlığında, 30-50cm uzunluğundadır.

    Birleşimi: Tarçın kabuğunun birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Eter yağı türevleri (uçucu yağlar) %1-2,5 arasında olup en önemlileri; Sinamikaldehit %65-75, Eugenel %5-10, Sinamikalkol, Sinamikasit, Cinamilasetat 0-Methoksisinamikaldehid, Kinolol, Phellandren, Pinen, Cymol ve Caryophyllen.
    b) Procyanidinler %2 arasında olup en önemlileri Procyanidin A2 ve bunun üçlü ve beşli bileşikler
    c) Diterpenler; Cinnzeylanol ve Cinnzeylanin
    d) Şeker türevlerinden Mannit içerir ve bu da %92 Xylozlar ve %8 Arabinozlardan oluşur.
    e) ayrıca musilaj, Nişasta, Fenolkarbonikasit, Klasiyumoksalat ve az miktarda β-Sitosterin

    Araştırmalar:
    1) Japonya’da Tarçın yağı ile yapılan bir dizi araştırmada (Mukherjee ve ekibi) antibakteriyel (bakterileri öldürücü) ve fungistatik (mantarları yok edici) özelliklere sahip olduğu tespit edilmiştir.
    2) Diş doktoruna gittim ve doktor önce dişimdeki bakterilere karşı an-tibiyotik (İsocillin) ve ağrı kesici (İbuflam) verdi. Bu ilaçları aldıktan sonra midem ağrımaya başladı ve aynı anda midemi üşütmemle birlikte midemden 15-20dk’da bir kramplar gelmeye ve beni rahatsız etmeye başladı. Bu rahatsızlıklardan kurtulmak için bir şeyler ararken elimde Türkiye’den gelirken getirdiğim tarçın kabuklarını fark etim ve bundan günde 5-6defa 2-3cm sakız gibi çiğnemeye başladım. Tam üç hafta boyunca çektiğim kramplı ağrılar iki günde iyileşti. (26.05.1999)

    Tesir şekli: Antibakteriyel (bakterileri öldürücü), fungustatik (mantarları yok edici), antiseptik, iç kanamaları önleyici, gaz söktürücü, ishali önleyici, antihelmintik (bağırsak kurt ve solucanlarını dökücü), vücudu ısıtıcı ve hafif cinsel gücü artırıcıdır.

    Kullanılması:
    a) Üniversite kliniklerinde yapılan araştırmalarda bakterileri öldürücü ve mantarları yokedici olduğu tesbitedilmiştir, fakat klinik araştırmaları yeterli değildir.
    b) Komisyon E’nin 01.02.1990 tarih ve 22nolu Monografi bildirisinde Tarçın kabuğu, yağı ve de ilaçlarının başta, iştahsızlık, hazımsızlık nedeni ile hafif kramplı mide-bağırsak rahatsızlıklarını, tıkanma ve şişkinliğe karşı kullanılır.
    c) Homeopati’de Tarçın tentürü iç kanamalara, burun kanamasına karşı kullanılır.
    d) Aromatedavisi; Tarçın yağı (uçucu yağı) dermansızlık, ağrı ve yutak iltihaplanması, dişeti kanaması, üşütme, grip, bağırsak enfeksiyonu, mide ve bağırsak krampları üşütmesi ve sindirim bozukluklarına karşı kullanılır.
    e) Halk arasında iştahsızlık, mide-bağırsak krampları, bağırsak mantarı, mide üşütmesi, hazımsızlık, şişkinlik, ishal, grip, dişeti ve ağız içi iltihap ve kanamalarına karşı kullanılır.

    Açıklama: Tarçın alırken Seylan tarçını mı, Çin tarçını mı olduğuna dikkat edilmelidir. Seylan tarçını birinci kalite Tarçın olup hem tedavi hem çay hem de baharat olarak kullanılırken Çin tarçını sadece baharat olarak kullanılabilir. Türkiye’de genellikle Tarçın deyince Çin tarçını veya kalitesi düşük tarçınlar satılmaktadır. Kaliteli tarçın kabuk halinde bulunan tarçındır. Bağırsak florası için en ideal bitkilerden biri de Tarçın kabuğudur. Çünkü bağırsaklarda artan mantarları ve Zararlı bakterileri Tarçının birleşimindeki maddeler yok eder. Mide-bağırsak üşütmelerine karşı da en etkili şifalı bitkilerdendir. Çünkü mide ve bağırsakları ısıtarak üşütmeyi önler. Şayet dilinizin rengi beyaz ise bu iki nedenden olabilir; şayet kısmen beyazsa mide-bağırsak üşütmüşsünüz demektir. Eğer dil tamamen beyaz ise bu da bağırsakların tamamen mantarlar tarafından kaplandığını gösterir.

    Çayı: tarçın tozundan 1 kahve kaşığı demliğe konur ve üzerine 300-400ml kaynar su ilave edilir. 5-10dk demlenmeye bırakıldıktan sonra süzülerek içilir.

    Çay Harmanları:

    Gökçek Mide çayı;
    >30 gr Rezene tohumu
    >20 gr Melek otu kökü
    >20 gr Kantaron otu
    >20 gr Oğulotu
    >10 gr Tarçın

    Gökçek Mide ve bağırsak çayı;
    >30 gr Rezene tohumu
    >20 gr Kimyon tohumu
    >20 gr Kakule
    >20 gr Kılıç otu
    >10 gr Tarçın kabuğu

    Gökçek Mide çayı (Hazımsızlık, Şişkinlik, Mide asidi yetmezliği)
    >30g Kantaron otu
    >30g Nane yaprağı
    >30g Tarçın kabuğu
    >10 Çentiyan

    Gökçek Mide ve Bağırsak çayı (tıkanma, şişkinlik, ve sinirsel mide ağrısı);
    >30 gr Kakule
    >30 gr Kimyon tohumu
    >30 gr Melek otu kökü
    >10 gr Tarçın kabuğu

    Gökçek Mide ve Bağırsak çayı (tıkanma, şişkinlik, ve sinirsel mide ağrısı);
    >30 gr Rezene tohumu
    >30 gr Kimyon tohumu
    >30 gr Melek otu kökü
    >10 gr Tarçın kabuğu

    Gökçek Mide ve Bağırsak çayı (şişkinlik,tıkanma ve sinirsel mide ağrısı)
    >30 gr Anason tohumu
    >30 gr Kimyon tohumu
    >30 gr Rezene tohumu
    >10 gr Tarçın kabuğu

    Gökçek iştah çayı (tıkanma, şişkinlik, asit yetersizliği);
    >20 gr Pelin otu
    >20 gr Mübarek otu
    >20 gr Kantaronotu
    >10 gr Tarçın kabuğu
    >10 gr Turunç kabuğu
    >10 gr Nane yaprağı
    >10 gr Acı yonca yaprağı

    Gökçek iştah çayı (mide rahatsızlıklarından tıkanma, şişkinlik ve asit yetersizliği);
    >20 gr Pelin otu
    >20 gr Kantaron otu
    >20 gr Turunç kabuğu
    >10 gr Çentiyan kökü
    >10 gr Acı yonca yaprağı
    >10 gr Tarçın kabuğu

    Aromaterapi: Tarçın kabuklarının su buharı ile damıtılması (destilasyonu) ile eter yağı (uçucu yağ) elde edilir ve bu yağ Aroma tedavisinde kullanılır.

    Homeopati’de: Tarçın kabukları toz haline getirildikten sonra 20gr bir şişeye konur ve üzerine 80ml %70’lik alkol ilave edilir. 4-6hafta güneş ışınlarından uzakta muhafaza edilir ve sonra süzülerek Homeopati’de <<Cinnamomum>> adı ile anılan tentür elde edilir. bu tentürden günde 3-4defa 10-15damla 4-6hafta süreyle alınır.

    Yan tesirleri: Tarçın kabuğunun bilinen bir yan tesiri yoktur fakat Tarçın eter yağının tarife uygun kullanılması gerekir. Aksi halde terleme, kalp çarpıntısı ve ishale sebep olabilir.

    Yorum yap


    • #3
      Cinnamomum zeylanicum (Canela) Uçucu Yağının Dört Farklı Konsantrasyonunun Candida albicans'a Karşı Antifungal Etkinliği : Bir In Vitro Çalışma

      René Hurtado , 1 Nimia Peltroche , 1 Franco Mauricio , 2 Walter Gallo , 3 Daniel Alvítez-Temoche , 2 Luzmila Vilchez , 1 ve Frank Mayta-Tovalino 3, 4
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      1 Akademik Departman, Universidad Nacional Federico Villarreal, Lima, Peru
      2 Doktora Bölümü, Diş Hekimliği Fakültesi, Universidad Nacional Federico Villarreal, Lima, Peru
      3 Rehabilitatif Stomatoloji Akademik Bölümü, Diş Hekimliği Fakültesi, Universidad Nacional Mayor de San Marcos, Lima, Peru
      4 Yüksek Lisans Bölümü, Sağlık Bilimleri Fakültesi, Universidad Científica del Sur, Lima, Peru
      Yazışma adresi: Dr. Frank Mayta-Tovalino, Lisansüstü Bölümü, Sağlık Bilimleri Fakültesi, Universidad Cientifica del Sur, Avenue Paseo de la República 5544, Miraflores 15074, Peru. E-posta: ep.ude.acifitneicu@tatyamf İlişkili Veriler

      Veri Kullanılabilirliği Bildirimi
      Git: ÖZET _

      Amaç:

      Bu çalışmanın amacı Cinnamomum zeylanicum (Canela) (EOC) uçucu yağının %25, %50, %75 ve %100'deki antifungal etkinliğini Candida albicans ATCC 10231 suşlarına karşı in vitro olarak karşılaştırmaktı . Malzemeler ve yöntemler:

      Tasarım, altı grup başına n = 30 petri kabı örneğine sahip deneysel, in vitro , prospektif ve boylamsal bir çalışmaydı . Test , Universidad Nacional Federico Villarreal'in mikrobiyoloji laboratuvarında gerçekleştirildi . Uçucu yağ, buhar damıtma ile hazırlandı, yani basınçlı buhar bitki hücreleriyle bağlantılı olarak girer ve onları kırar, özü serbest bırakır ve onu su damlaları içinde hapseder. Hidrodistilasyon yöntemi kullanılarak tarçın esansiyel yağı elde edilmiş, daha sonra elde edilen yağ sodyum sülfat ile dehidre edilmiş ve daha sonra 0.22 µm'de filtre edilmiştir. Daha sonra şişeler, 4°C'lik bir sıcaklıkta saklandı. Son olarak, Candida albicansBiyolojik materyal olarak ATCC 10231 kullanılmıştır. Antifungal etkinlik, Kirby-Bauer yöntemiyle (disk difüzyonu) ölçüldü. Sonuçlar:

      24 saatlik grupta en yüksek antifungal etkiye sahip konsantrasyonun ortalama 22.1 ± 11 mm ile %100 EOC olduğu; ancak en düşük antifungal aktivite 17,9 ± 1,6 mm ile %25 EOC'de görüldü. Buna karşılık 48 saat grubunda en yüksek antifungal etkinliğin ortalama 31,2 ± 3,2 mm ile %100 EOC'de de gözlendiği, ancak en düşük antifungal aktivitenin 22,6 ± %25 EOC'de olduğu gösterildi. 1,7 mm. Her iki grupta da, hem 24 hem de 48 saatte, sırasıyla 15.1 ± 1.0 ve 19.9 ± 0.1 mm ile en düşük antifungal etkinliğe sahip olan nistatindi. Sonuçlar:

      EOC, nistatin ile karşılaştırıldığında istatistiksel olarak daha iyi bir antifungal etkiye sahipti. Aksi takdirde, farklı konsantrasyonlardaki sonuçların analizinde, EOC , nistatin ile karşılaştırıldığında C. albicans ATCC 10231 suşlarına karşı konsantrasyon arttıkça doğrudan orantılı bir antifungal etkinlik gösterdi ve bu da onun kontrol için olası çekici bir terapötik alternatif olarak potansiyel kullanımını düşündürdü. nistatine dirençli C. albicans suşlarının neden olduğu hastalıkların

      ANAHTAR keli̇meler:Antifungal etkinlik , Candida albicans , Canela , Cinnamomum zeylanicum , uçucu yağ
      Git: GİRİŞ _

      Ağız boşluğu, bakteriyel, viral, paraziter veya mantar enfeksiyonları gibi birçok hastalığa sahiptir. İkincisi, kandidiyazis, oral mikoz ile ilişkili ana türdür. Günümüzde insidansı, insanlara zararlı farklı predispozan faktörler nedeniyle en gelişmiş ülkelerde artmaktadır çünkü kandida enfeksiyonlarının prevalansı, antifungal tedavi alanındaki önemli ilerlemelere rağmen tıp için bir sorun olmaya devam etmektedir.[ 1 ]

      Candida cinsi mantarlar gibi fırsatçı mikroorganizmalar , diş muayenehanesine giden her bin hastadan dördünde kandidiyazis enfeksiyonu semptomları olduğu düşünülürse, ağız boşluğunda uygun bir ortam bulur.[ 2 , 3 , 4 , 5 ] Doğal uygulama tıp mükemmel sonuçlar göstermiştir, ancak birçok şifalı bitkinin sahip olduğu özelliklerin denenmemesi ve araştırılmaması, kullanımlarının boşa gitmesi ve azalması nedeniyle sentetik ürünlerin kullanımına hala büyük bir talep vardır. Uçucu yağlar gibi tıbbi maddelerin kullanımı şu sıralar yeni bir ivme yaşayan bir uygulamadır. gibi çok çeşitli doğal kaynaklara sahiptir.Cinnamomum zeylanicum (Canela), etkinliğini bir dizi mikroorganizma üzerinde ampirik ve metodolojik olarak göstermiştir.[ 6 , 7 ]

      Eski zamanlardan beri şifalı bitkilerin şifa amaçlı bazı faydaları bilinmektedir. Doğal ilaçlar ve özellikle şifalı bitkiler, doktorların elindeki birincil ve hatta tek çareydi. Fitoterapi, patolojik bir durumu önleme, hafifletme veya iyileştirme amaçlı olsun, rehabilite edici bir amaçla bitki kökenli ürünlerin uygulanmasını inceleyen bilim olarak bilinir. Aynı zamanda, tıbbi özelliklere sahip şifalı otların veya bunların türevlerinin kullanılması yoluyla sağlığın iyileştirilmesine yönelik müdahaleyi ifade eder.[ 8 , 9 ]

      Geleneksel olarak, uçucu yağ, doğal kaynağın önceden tamamen kuru ve temiz olması gereken solvent ekstraksiyonu ve/veya maserasyon ve ekstraksiyon yoluyla buhar sürükleme damıtma yöntemiyle elde edilir. Esansiyel yağlar, bitkilerin sekonder metabolitlerinden yapılan uçucu maddelerin karmaşık bir bileşimi olduklarından, bitkide tekdüze olmayan bir şekilde sadece bazı kısımlarında, örneğin çiçeklerde entegre oldukları için tıpta potansiyel bir kullanıma sahiptir. , tohumlar, ağaç kabuğu, ağaç, kökler veya rizomlar, ancak daha sık olarak yapraklarda ve gövdelerde bulunur ve bitki materyalinin buharla sürüklenmesi, buhar damıtması ve hidrodistilasyon yoluyla bitkilerden elde edilir.[ 7 , 10 , 11] Bu nedenle, oral kandidiyazis insidansı göz önüne alındığında, önleme ve tedavi konusunda acilen çalışmaya ihtiyaç vardır, bu nedenle şifalı bitkilere atfedilen etkili ve güvenli etkileri olan terapötik alternatiflere sahip olmalıyız.

      Bu nedenle, bu in vitro çalışmanın amacı, C. zeylanicum (Canela) (EOC) esansiyel yağının dört farklı konsantrasyonunun Candida albicans ATCC 10231'e karşı antifungal etkinliğini belirlemekti .

      Git: MATERYAL ve YÖNTEMLER _

      ÇALIŞMA tasarımı

      Tasarım, deneysel bir in vitro , uzunlamasına ve karşılaştırmalı bir çalışmaydı. Analiz birimi, C. albicans ATCC 10231 suşları ile aşılanmış bir petri kabından oluşuyordu. Numune boyutu, bir a ile Stata 15 Statistical Software'in (StataCorp, College Station, Texas) kullanıldığı ortalama karşılaştırma formülü kullanılarak belirlendi. 0,05 ve β 0,8. Her deney grubu için bir n = 30 disk belirlendi.

      Son olarak, bu araştırma Universidad Nacional Federico Villarreal Diş Hekimliği Fakültesi mikrobiyoloji laboratuvarında gerçekleştirildi ve aşağıdaki gruplar oluşturuldu:

      Grup 1: C. albicans ile aşılanmış %25 EOC'li petri kapları

      Grup 2: C. albicans ile aşılanmış %50 EOC'li petri kapları

      Grup 3: C. albicans ile aşılanmış %75 EOC'li petri kapları

      Grup 4: C. albicans ile aşılanmış %100 EOC'li petri kapları

      Grup 5: Nistatin (Mycostatin) oral süspansiyon 100.000 U/mL

      Grup 6: Negatif kontrol olarak infüzyon için fizyolojik serum %0,9 Baxter (ClearFlex) solüsyonu KİMYASALLAR , medyumlar ve mikroorganizma

      C. albicans ATCC 10231 suşu, Peru'dan Laboratuar Gen Lab'den temin edilmiştir. Aynı üreticinin talimatlarına göre hazırlanmış SAC Sabouraud dekstroz, Mueller Hinton agar ve susuz sodyum sülfat (Na2S04 ) ( Merck , Darmstadt, Almanya) kullanılmıştır. standartlar. BİTKİ koleksiyonu

      Tarçın, Sri Lanka Demokratik Sosyalist Cumhuriyeti'nden ithal edilmiştir (Enlem: 7°52' 38.72” K ve boylam: 80°42'1.23”D). Böylece, 1000 g tarçın kabuğu toplandı, tanımlandı ve herhangi bir morfolojik değişiklik belirtisi olmadığı doğrulandı.Şekil 1]. Daha sonra kupon no. 301-2018-DA-FO-UNFV, çevrenin özelliklerini etkilemesini önlemek için Kraft kağıt torbalarda saklandı.

      Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı JISPCD-10-724-g001.jpg'dir.
      Şekil 1
      Cinnamomum zeylanicum (Canela) tozu esansiyel yağın HAZIRLANMASI

      Hidrodistilasyon yöntemi kullanılarak tarçın esansiyel yağı elde edilmiş, daha sonra elde edilen yağ Na2S04 ile dehidre edilmiş ve daha sonra 0.22 µm'de filtrelenmiştir. Daha sonra şişeler, 4°C'lik bir sıcaklıkta saklandı. Tüm analizler araç olarak helyum gazı ile 50°C başlangıç ​​sıcaklığında elde edilmiştir. Damıtmanın sonucu olan hidrolat, karışmazlık özellikleri ve su ile uçucu yağ arasındaki yoğunluk farkı dikkate alınarak, cam armut biçimli bir ayırma hunisi kullanılarak, sudan arındırılarak ve uçucu yağ safsızlıkları Na2S04 ile ayrıldı .susuz; saf yağ süzüldü ve kullanılana kadar -20°C'de saklandı. Uçucu yağ konsantrasyon preparatları, temel özellikleri kahverengimsi sarı, yağlı sıvı ve suda çözünür, susuz etanol ve metanol olan polioksietilen sorbitan esterleri oldukları için polisorbat olarak da bilinen Tween çözeltisi kullanılarak yapılmıştır. Yoğunluğu 1.10 g/ml olan; 16.7'lik HLB (Hidrofilik-Lipofilik Denge); ve 1227.5 moleküler ağırlık. Daha sonra, katılaşmayı önlemek için tarçın esansiyel yağlarının konsantrasyonları 37°C'deki bir su banyosuna yerleştirildi. MANTAR kültürü

      Daha sonra uçucu yağın ekstraksiyonu sonucunda %25, %50, %75 ve %100'lük dilüsyonlar hazırlanmış, farklı şişelere yerleştirilmiş ve uygun şekilde etiketlenmiştir. Ekimler, mantarların (mayalar ve dermatofitler) kültivasyonu için Saboraud dekstroz agarda gerçekleştirildi. Kültürler yapıldıktan sonra 24 saat süreyle 37°C'de inkübatörde saklandı. Bakteri kolonilerinin üremesi sağlandıktan sonra duyarlılık testleri yapılmıştır. Petri kapları, her plakaya C. albicans ekilen Mueller Hinton agar ile uygun hale getirildi.ATCC 10231. Daha sonra, her bir petri kabında beş oyuk yapıldı: EOC'nin dört konsantrasyonu için dört oyuk ve nistatin için sonuncusu. Son olarak inhibisyon haleleri, 24 ve 48 saatlik aralıklarla bir Mitutoyo kalibratörü ile ölçüldü. antifungal BİR AKTİVİTE

      Doğrudan gözlem yapıldı ve suşlarda EOC ve nistatinin %25, %50, %75 ve %100'ünde dört konsantrasyonun inhibitör halo ölçümü (Kirby-Bauer yöntemi)[ 6 , 8 , 9 , 10 ] Candida albicans ATCC 10231 alındı ; elde edilen veriler, EOC ile gömülü disklerin her birinde oluşan inhibisyon halelerinin milimetre cinsinden ölçüldüğü bir veri toplama sayfasına kaydedildi. Ekimden sonraki 24 ve 48 saatlik süre içinde, numunenin tanımlanması, kullanılan konsantrasyonun tanımlanması ve oluşan inhibisyon halesinin milimetre cinsinden ölçümü dikkate alınarak toplama sayfasının okumaları ve doldurulması yapılmıştır. [şekil 2].
      Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı JISPCD-10-724-g002.jpg'dir.
      şekil 2
      Cinnamomum zeylanicum'un (Canela) antifungal etkinliğini engelleyen halelerin ölçümü İSTATİSTİK analiz

      Veriler, Stata® 15 istatistik programı (College Station, Texas 77845 ABD) kullanılarak analiz edildi. Normallik testi ilk olarak Shapiro-Wilk testi ile uygulanmıştır. İki değişkenli analizi gerçekleştirmek için, çoklu karşılaştırmalar için Student t testi ve varyans analizi (ANOVA) kullanıldı ve böylece bir öncesi ve sonrası prospektif sonucu elde edildi. Kullanılan istatistiksel anlamlılık seviyesi P < 0.05 idi.

      Git: SONUÇLAR _

      Buna göretablo 124 saatlik grupta en yüksek antifungal etkiye sahip konsantrasyonun ortalama 22,1 ± 11 mm ile %100 EOC olduğu; ancak en düşük antifungal aktivite 17,9 ± 1,6 mm ile %25 EOC'de görüldü. Buna karşılık 48 saat grubunda en yüksek antifungal etkinliğin ortalama 31,2 ± 3,2 mm ile %100 EOC'de de gözlendiği, ancak en düşük antifungal aktivitenin 22,6 ± %25 EOC'de olduğu gösterildi. 1,7 mm Her iki grupta da, hem 24 hem de 48 saatte, nistatin en düşük antifungal etkinliğe sahip olandı, sırasıyla 15,1 ± 1,0 ve 19,9 ± 0,1 mm [Grafik 1]. tablo 1

      Cinnamomum zeylanicum uçucu yağının farklı konsantrasyonlarda zamana göre antifungal etkinliği
      24 saat EOK %25 17.9 1.6 15.0 19.0
      EOK %50 19.5 1.1 18.0 21.0
      EOC %75 20.9 1.1 18.0 22.6 0,05
      EOC %100 22.1 1.1 19.9 23.5
      nistatin 15.1 1.0 13.1 16.9
      48 saat EOK %25 22.6 1.7 20.0 25.5
      EOK %50 27.0 0.8 25.9 28.1
      EOC %75 27.8 2.0 23.5 30.9 0,05
      EOC %100 31.2 3.2 26.0 36.9
      Ayrı bir pencerede aç
      *Shapiro–Wilk testi; Tüm gruplar normal dağılım gösterdiğinden çıkarımsal istatistiklerde parametrik testlerin kullanılmasına karar verildi. Fizyolojik serum grubu, herhangi bir antifungal etki göstermediği için herhangi bir istatistiksel analizin dışında tutuldu.

      Resim, çizim vb. tutan harici bir dosya. Nesne adı JISPCD-10-724-g003.jpg'dir.
      Grafik 1
      Cinnamomum zeylanicum uçucu yağının etkinliğinin tanımlayıcı analizi

      Tablo 2nistatin ile EOC'nin dört konsantrasyonunun (%25, %50, %75 ve %100) hem 24 hem de 48 saatte antifungal etkinliği karşılaştırıldığında, istatistiksel olarak anlamlı farkların bulunduğunu gösterir ( P < 0.001 ) . Aksi takdirde, her bir konsantrasyonun etkinliğini bağımsız olarak 24 saate karşı 48 saatte karşılaştırırken, P < 0.001 ile istatistiksel olarak anlamlı farklılıklar da bulundu [Grafik 2]. Tablo 2

      Cinnamomum zeylanicum esansiyel yağının farklı konsantrasyonlarının antifungal etkinliğinin konsantrasyon ve zamana göre in vitro karşılaştırılması
      24 saat 17,9 ± 1,6 19,5 ± 1,1 20,9 ± 1,1 22,1 ± 1,1 15,1 ± 1,0 <0,001
      48 saat 22,6 ± 1,7 27,8 ± 0,8 27,8 ± 2,0 31,2 ± 3,2 19,9 ± 0,1 <0,001
      P* <0,001 <0,001 <0,001 0,001 0,008
      Ayrı bir pencerede aç
      EOC = Cinnamomum zeylanicum esansiyel yağı

      *Student t testi, **ANOVA testi; anlamlılık düzeyi ( P < 0.05)

      Değerler, Kirby-Bauer tekniği ile inhibisyon haleleri aracılığıyla (milimetre olarak) ölçüldü. Fizyolojik serum grubu, herhangi bir antifungal etki göstermediği için herhangi bir istatistiksel analizin dışında tutuldu.

      Resim, çizim vb. içeren harici bir dosya. Nesne adı JISPCD-10-724-g004.jpg'dir.
      Grafik 2
      Cinnamomum zeylanicum esansiyel yağının dört konsantrasyonunun antifungal etkinliğinin in vitro karşılaştırılması

      Tablo 3EOC'nin farklı konsantrasyonlarının antifungal etkinliğinin post hoc in vitro karşılaştırmasında, değerlendirilen tüm gruplar arasında (EOC %25, EOC %50, EOC %75 ve EOC %100) istatistiksel olarak anlamlı farklılıklar gözlendiğini gösterir. P < 0.001. Tablo 3

      Cinnamomum zeylanicum esansiyel yağının farklı konsantrasyonlarının antifungal etkinliğinin post hoc in vitro karşılaştırması
      EOK %25 EOK %50 0,001
      EOC %75 0,001
      EOC %100 0,001
      EOC %75 EOK %25 0,001
      EOK %50 0,001
      EOC %100 0,001
      EOC %100 EOK %25 0,001
      EOK %50 0,001
      EOC %75 0,001
      nistatin EOK %25 0,001
      EOK %50 0,001
      EOC %75 0,001
      Ayrı bir pencerede aç
      EOC = Cinnamomum zeylanicum esansiyel yağı

      *Student t testi ve **Bonferroni testi; anlamlılık düzeyi ( P < 0.05)

      Değerler, Kirby-Bauer tekniği ile inhibisyon haleleri (mm cinsinden) aracılığıyla ölçülmüştür. Fizyolojik serum grubu, herhangi bir antifungal etki göstermediği için herhangi bir istatistiksel analizin dışında tutuldu.

      Git: TARTIŞMA _

      Hastalıkların tedavi başarısındaki dezavantajlardan biri, mikroorganizmaların geleneksel ilaçların kullanımına karşı geliştirdikleri dirençtir, bu nedenle yüksek aktiviteye ve düşük toksisiteye sahip antifungal bileşiklerin geliştirilmesi ihtiyacı ortaya çıkmaktadır. Bu nedenle potansiyel antifungal ajanlar olarak bitkiler ve bileşenleri üzerinde araştırmalar başlatılır.[ 12 , 13 , 14 ] Geleneksel olarak, aromatik bitkilerin uçucu yağlarının mantar hastalıklarını tedavi etmek için mükemmel terapötik ajanlar olduğu keşfedilmiştir. Bazı antifungallere dirençli Candida türleri yeni ortaya çıkan bir sorundur.[ 15 ]

      Bu araştırmanın sonuçları literatürle karşılaştırıldığında, enfeksiyonlarla ilişkili farklı mikroorganizmalara karşı EOC'nin özelliklerini araştıran çalışmaların olduğu aşikardır.[ 16 , 17 , 18 , 19 , 20 ] Örneğin, Farisa Banu ve ark. ,[ 1 ] Candida türleri için büyüme eğrisini değerlendirdiler . ve böylece antifungal etkinliği doğruladı ve 24 saatlik inkübasyondan sonra mantar büyümesinde önemli bir azalma olduğunu buldu. Benzer şekilde, Shahina ve ark. [ 2 ] tarçın kabuğu ekstraktının ( C. zeylanicum), C. albicans'a karşı inhibe edici aktiviteye sahipti , ancak bu fenomeni anlamak için daha fazla çalışmaya ihtiyaç var. Bu muhtemelen, bu araştırmada kullanılan uçucu yağın terpenoidler, fenoller ve aldehitlerden oluşması gerçeğinden kaynaklanmaktadır, bu da uçucu yağların dirençli mikroplarla savaşmak için yeni antifungal maddeler olarak hizmet edebileceğini düşündürebilir.

      Bununla birlikte, Rangel ve diğerleri tarafından yapılan bir çalışma . [ 5 ] Candida tropicalis türleri durumunda ergosterol varlığını göstermiştir ; EOC, hücre zarının geçirgenliği üzerinde zayıf bir aktiviteye sahiptir. Bu etki C. albicans suşlarında bulunmadı çünkü ergosterol varlığı minimum inhibitör konsantrasyondaki (MIC) artışla ilişkili değildi. Ayrıca, C. zeylanicum Blume'un yapraklarından ekstrakte edilen esansiyel yağın bir bileşeni olarak öjenol vardı ve bu ona Candida spp., ancak faz I ve II klinik deneylerinin performansı oral mantarlar üzerinde test edilmelidir, bu nedenle bilimsel olarak sonuca varın. Çalışma, Thymus capitatus esansiyel yağının flukonazole duyarlı Candida türlerine karşı anti-kandida gücünü vurgulamıştır.

      Aksine, Pelargonium graveolens ve Cinnamomum verum esansiyel yağı , flukonazole dirençli C. albicans suşuna karşı antifungal ilaç flukonazol ile sinerjistik bir etki göstermiştir . Bu kombinasyonlar, flukonazolün etkinliğini arttırmada etkili olabilir. C. verum ve P. graveolens esansiyel yağının flukonazol ile sinerjistik aktivitesi, Candida hücrelerinde birden fazla bölgeyi kapsayabilir. P. graveolens, yağ asidi biyosentezini inhibe ederek ve ergosterol inhibisyonuna yol açan Candida hücrelerine flukonazol girişini iyileştirerek hücre duvarı sentezine yönlendirilir.[ 3 ]

      Wang ve arkadaşlarına göre . Tarçın yağı ve pogostemon yağı komplekslerinin Candida'nın neden olduğu bağırsak enfeksiyonlarına karşı antifungal mekanizmalarını ve iyileştirici etkilerini araştıran [ 12 ], mantar komplekslerinin ortalama MİK değerleri 0.064mg/mL (tarçın yağı), 0.032mg/ olarak bulundu . C. albicans için mL (pogostemon yağı) ; bu nedenle tarçın yağları ve pogostemon yağının C. albicans , C. tropicalis ve Candida krusei'ye karşı güçlü antifungal etkilere sahip olduğu sonucuna varılmıştır.ve mantarın morfolojisini ve alt mikro yapılarını 48-72 saatte etkilediler ve sonunda hücreleri denatüre edip öldürdüler. Bu araştırma sonucunda sulu tarçın ekstraktının antifungal etkisinin olmadığını, EOC'nin ise C. albicans üzerinde olumlu sonuçlar verdiğini gözlemlemişlerdir . Bu sonuçlar, diğer çalışmaların [ 1 , 2 , 5 , 7 ] sonuçlarıyla birlikte araştırmamızla tutarlıdır, çünkü C. zeylanicum'un (Canela) esansiyel yağı, nistatine kıyasla daha büyük bir inhibisyon halesi oluşturarak daha büyük bir antifungal etkinlik elde etmiştir. 24 saatlik süre.

      Bu araştırmada, nistatinin bilimsel desteğinin büyük olması nedeniyle en çok reçete edilen ilaçlardan biri olması nedeniyle pozitif kontrol grubu olarak kullanılmasına karar verilmiş, bu nedenle bu ilaçta da kontrol grubu olarak kullanılan sonuçlarımızla karşılaştırmalı olarak yapılmıştır. Bu araştırmanın ana sınırlaması, bir suşa ve tek bir pozitif kontrol grubuna karşı yalnızca antifungal etkinliğin gösterilmesiydi; ancak, bu doğal kaynağın etkinliğini diğer antifungallerle karşılaştırmak önemlidir. Diğer bir sınırlama , tarçının yalnızca mantar önleyici etkinliğinin değerlendirilmesi ve Peru'nun diğer doğal kaynaklarıyla bir sinerji olup olmadığının doğrulanmamasıydı .] ulusal bölgede de kolayca elde edilebilir. Ancak tüm bu kısıtlılıklara rağmen bu çalışma başarıyla gerçekleştirilmiştir. Son olarak, EOC ile karşılaştırıldığında davranışı karşılaştırmak için diğer antifungal ilaçlarla çalışmaların yapılması önerilir. Ek olarak, EOC, geleneksel ilaçlara dirençli diğer mantar suşlarına karşı değerlendirilmelidir. Son olarak, C. zeylanicum'un (tarçın) aktif bileşenlerinin sağlayabileceği etkinlik ve toksisiteyi değerlendirmek ve " in vitro " sonuçların benzer olup olmadığını kontrol etmek için " in vivo " çalışmalar yapılmalıdır .

      Git: SONUÇ _

      Bu çalışmada bulunan sonuçlara göre, EOC'nin nistatine kıyasla istatistiksel olarak daha iyi bir antifungal etkiye sahip olduğu sonucuna varılmıştır. Ayrıca, farklı konsantrasyonlardaki sonuçların analizinde, EOC, nistatin ile karşılaştırıldığında C. albicans ATCC 10231 suşlarına karşı konsantrasyon arttıkça doğrudan orantılı bir antifungal etkinlik gösterdi ve bu da onun kontrol için olası çekici bir terapötik alternatif olarak potansiyel kullanımını düşündürdü. nistatine dirençli C. albicans suşlarının neden olduğu hastalıkların FİNANSAL destek ve sponsorluk

      sıfır. ÇIKAR çatışmaları

      Bildirecek yok. YAZARIN katkıları

      Çalışma anlayışı (RH, NP), veri toplama (RH, NP, FM, WG), veri toplama ve analizi (DAT, FMT, LV), veri yorumlama (WG, FM, FMT), makale yazımı (FMT, DAT, FM) , SV). E tik politika ve kurumsal değerlendirme kurulu beyanı

      Bu proje deneysel bir in vitro çalışma olduğu için etik onaydan muaftır . HASTA ONAY beyanı

      Uygulanamaz. VERİ kullanılabilirlik beyanı

      Çalışma sonuçlarını destekleyen veriler istek üzerine yazardan (Dr. Frank Mayta-Tovalino, e-posta: ep.ude.acifitneicu@tatyamf ) temin edilebilir.

      Git: TEŞEKKÜRLER _

      Makalenin hazırlanmasında bizi sürekli desteklediği için Universidad Cientifica del Sur'a (UCSUR) teşekkür ederiz.

      Git: REFERANSLAR _

      1. Farisa Banu S, Rubini D, Shanmugavelan P, Murugan R, Gowrishankar S, Karutha Pandian S, et al. Paçuli ve tarçın esansiyel yağlarının Candida türlerinin biyofilm ve hif oluşumu üzerindeki etkileri . J Mycol Med. 2018; 28 :332–9. [ PubMed ] [ Google Akademik ]
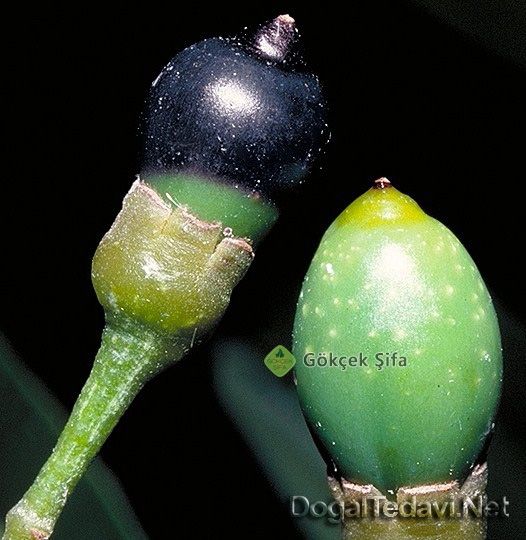
      2. Shahina Z, El-Ganiny AM, Minion J, Whiteway M, Sultana T, Dahms TES. Cinnamomum zeylanicum kabuğu esansiyel yağı, Candida albicans'ta hücre duvarı yeniden modellenmesine ve iğ kusurlarına neden olur . Fungal Biol Biyoteknol. 2018; 5 :3. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      3. Essid R, Hammami M, Gharbi D, Karkouch I, Hamouda TB, Elkahoui S, et al. Cinnamomum verum ve Pelargonium graveolens esansiyel yağlarının flukonazol ile kombinasyonunun patojenik Candida suşlarına karşı antifungal mekanizması. Appl Microbiol Biotechnol. 2017; 101 :6993–7006. [ PubMed ] [ Google Akademik ]
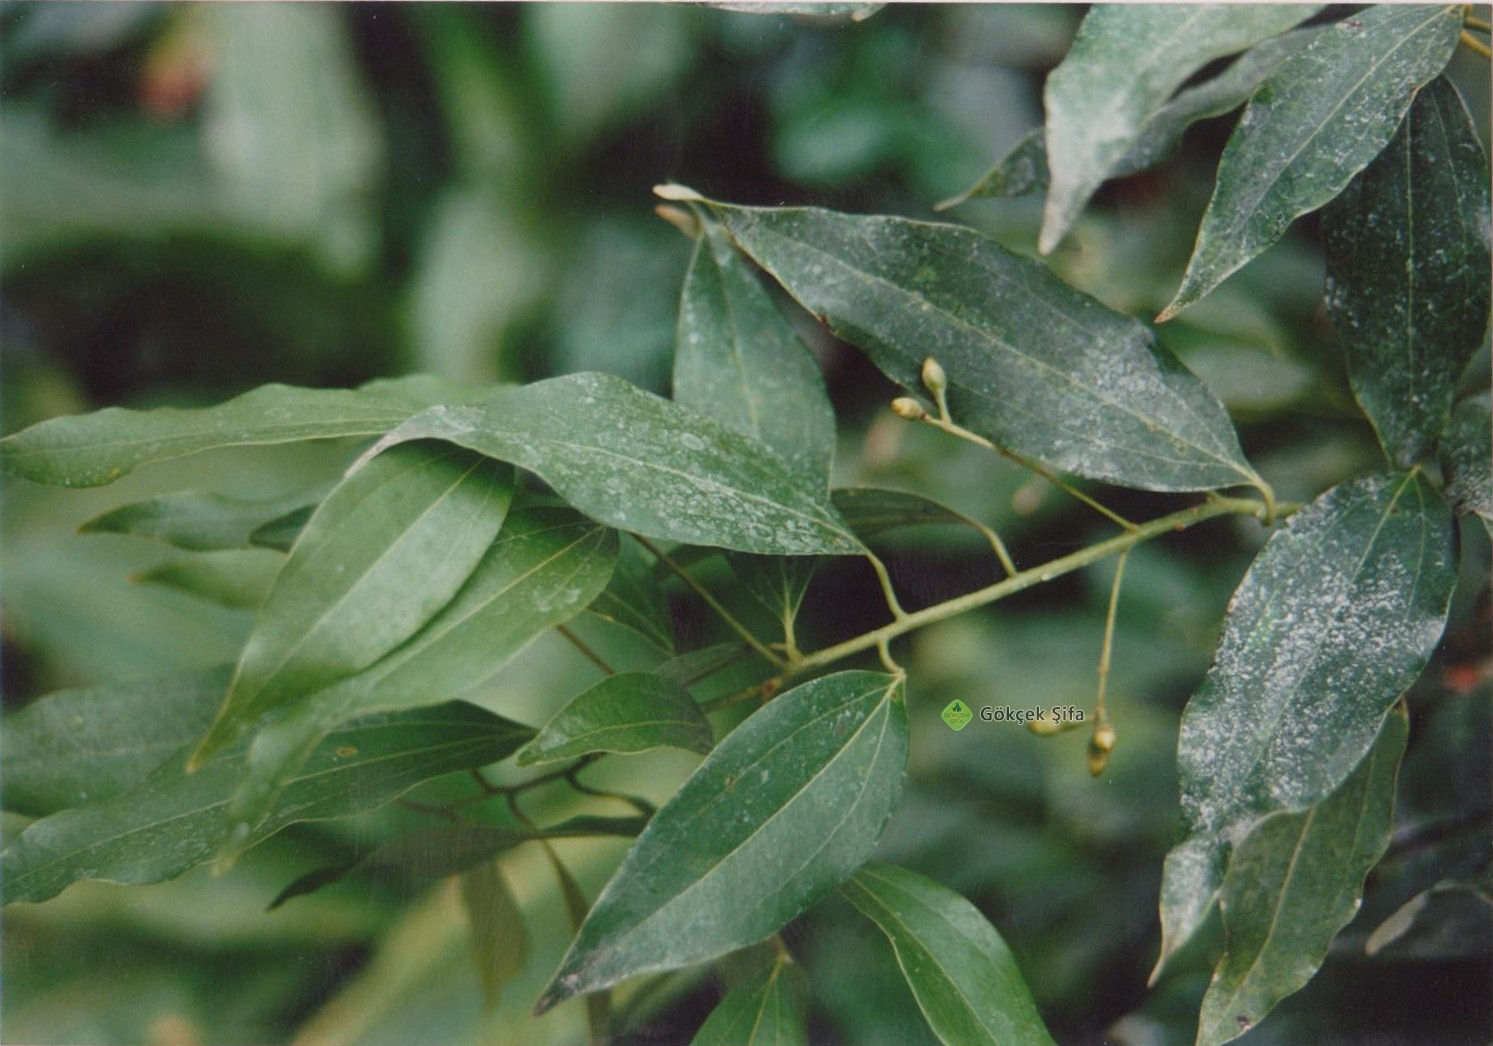
      4. Pires RH, Montanari LB, Martins CH, Zaia JE, Almeida AM, Matsumoto MT, et al. Tarçın yağının Candida parapsilosis ve Candida orthopsilosis'in planktonik ve biyofilm kültürlerine karşı antikandidal etkinliği . Mikopatoloji. 2011; 172 :453–64. [ PubMed ] [ Google Akademik ]
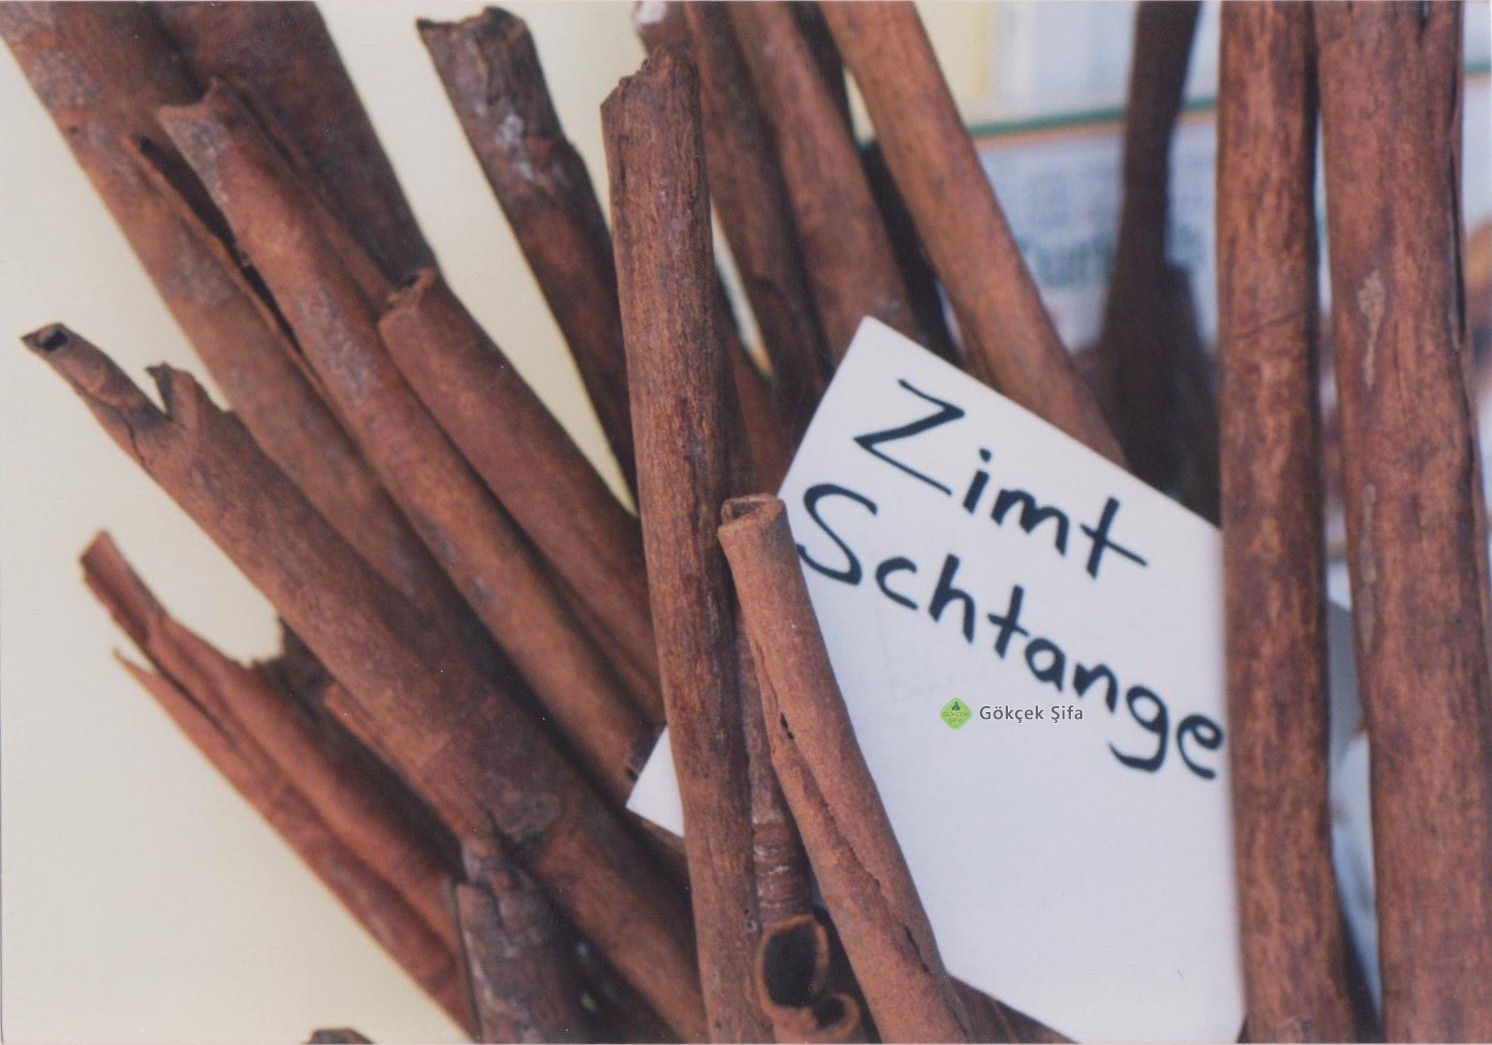
      5. Rangel ML, de Aquino SG, de Lima JM, Castellano LR, de Castro RD. Cinnamomum zeylanicum Blume esansiyel yağının Candida türleri üzerindeki in vitro etkisi . oral enfeksiyonlarda rol oynar. Kanıta Dayalı Tamamlayıcı Alternatif Med. 2018; 2018 :4045013. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      6. Poma-Castillo L, Espinoza-Poma M, Mauricio F, Mauricio-Vilchez C, Alvítez-Temoche D, Mayta-Tovalino F. Candida albicans üzerinde etanolle ekstrakte edilmiş Bixa orellana (L) (Achiote)'nin antifungal aktivitesi , altıda farklı konsantrasyonlar. J Küçümseme Uygulaması. 2019; 20 :1159–63. [ PubMed ] [ Google Akademik ]
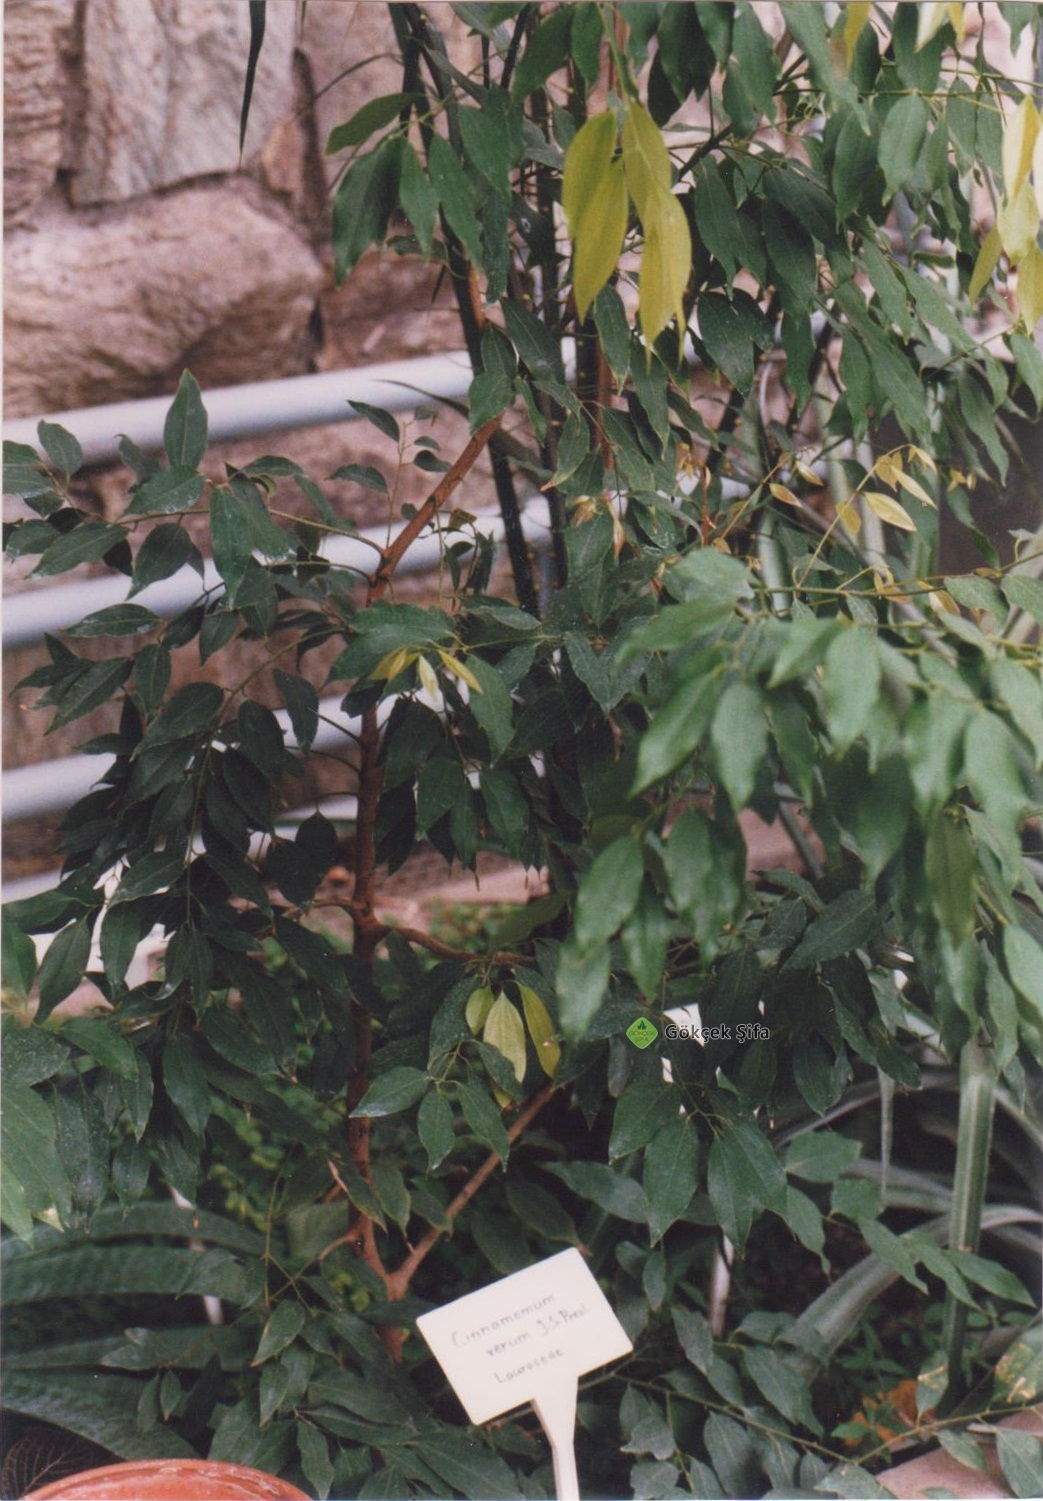
      7. Soares IH, Loreto ÉS, Rossato L, Mario DN, Venturini TP, Baldissera F, et al. Baharatlardan ekstrakte edilen uçucu yağların flukonazole dirençli ve duyarlı Candida glabrata'ya karşı in vitro aktivitesi . J Mycol Med. 2015; 25 :213–7. [ PubMed ] [ Google Akademik ]
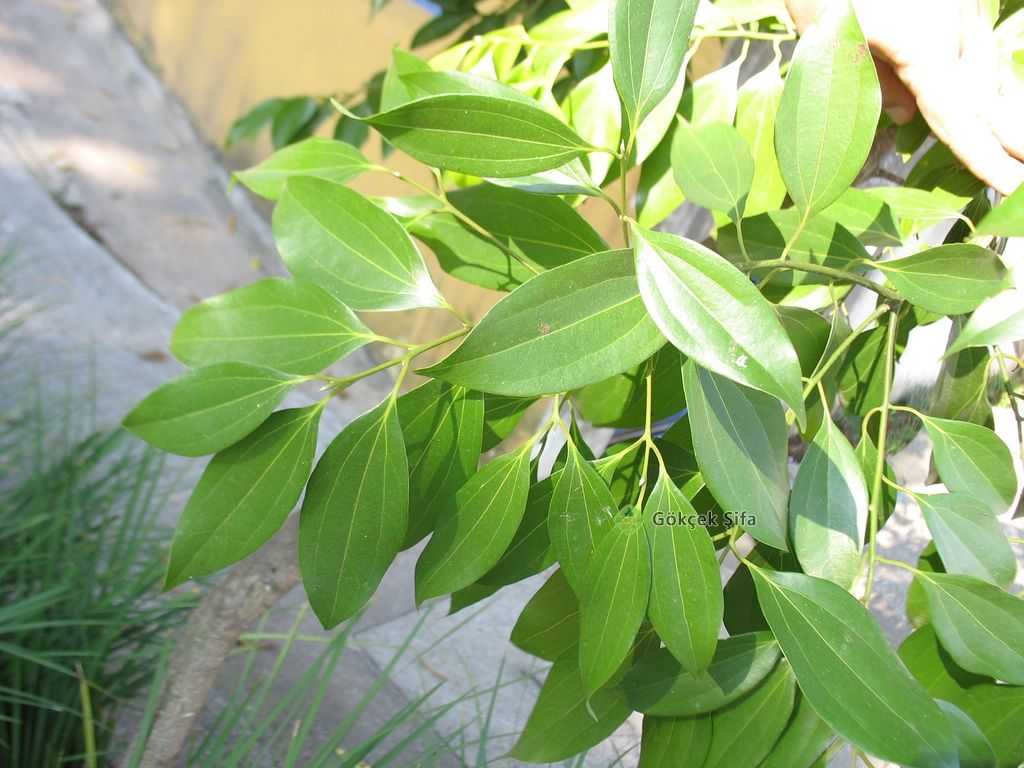
      8. Mayta-Tovalino F, Gamboa E, Sánchez R, Rios J, Medina R, García M, et al. Florür anyonu içeren ve içermeyen Passiflora mollissima'ya (Tumbo) dayalı deneysel diş temizleme ürününün geliştirilmesi ve formülasyonu : Yedi antimikrobiyal suş üzerinde antibakteriyel aktivite. Int J Dent. 2019; 2019 :9056590. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      9. Calderon A, Salas J, Dapello G, Gamboa E, Rosas J, Chavez J, et al. Peru Passiflora mollisima'nın antibakteriyel ve antifungal özelliklerinin ve in vivo sitotoksisitesinin değerlendirilmesi . J Küçümseme Uygulaması. 2019; 20 :145–51. [ PubMed ] [ Google Akademik ]
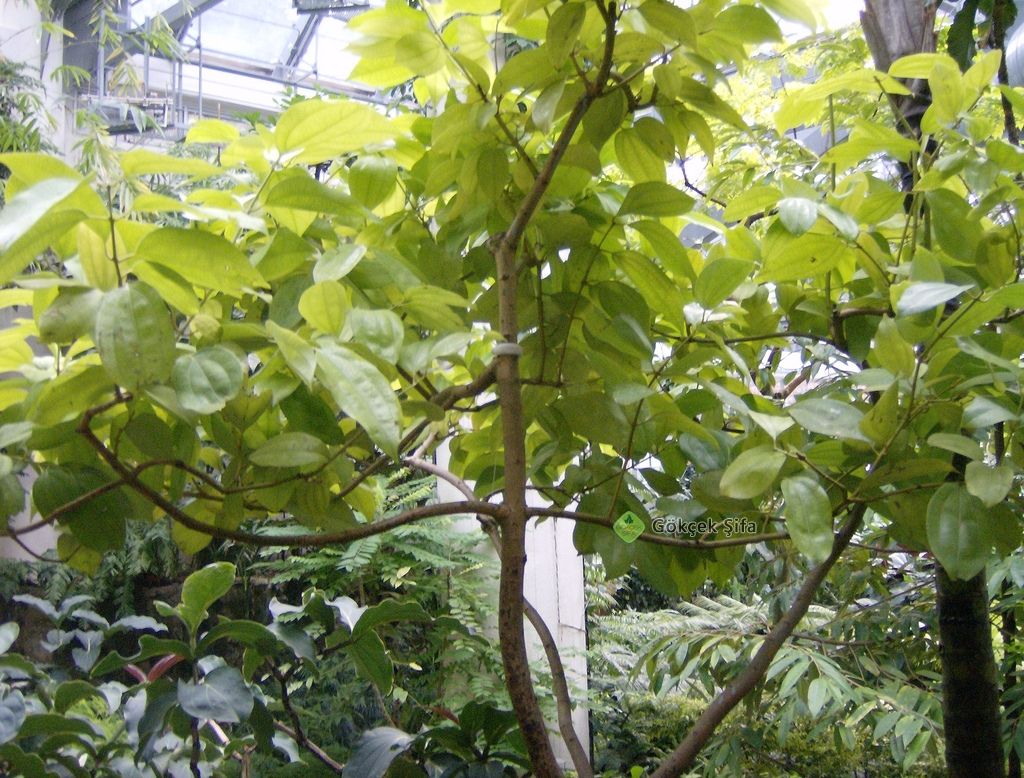
      10. Mayta-Tovalino F, Sedano-Balbin G, Romero-Tapia P, Alvítez-Temoche D, Álvarez-Paucar M, Gálvez-Calla L, et al. Su stresi ile fermente edilmiş Perulu Solanum tuberosum'un (Tocosh) yeni deneysel diş macununun geliştirilmesi : Antibakteriyel ve sitotoksik aktivite. J Küçümseme Uygulaması. 2019; 20 :1206–11. [ PubMed ] [ Google Akademik ]
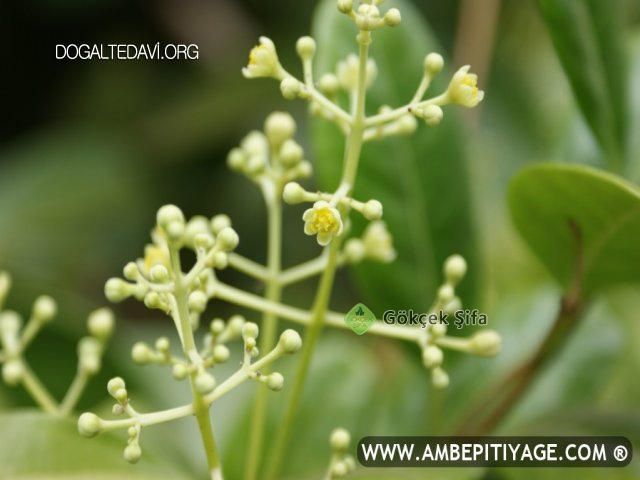
      11. Miller AB, Cates RG, Lawrence M, Soria JA, Espinoza LV, Martinez JV, et al. Guatemala şifalı bitkilerinden elde edilen uçucu yağların antibakteriyel ve antifungal aktivitesi. Eczacı Biol. 2015; 53 :548–54. [ PubMed ] [ Google Akademik ]
      12. Wang GS, Deng JH, Ma YH, Shi M, Li B. Üç Candida türüne karşı tarçın yağı ve pogostemon yağı kompleksinin mekanizmaları, klinik olarak iyileştirici etkileri ve antifungal aktiviteleri . J Tradit Chin Med. 2012; 32 :19–24. [ PubMed ] [ Google Akademik ]
      13. Pozzatti P, Scheid LA, Spader TB, Atayde ML, Santurio JM, Alves SH. Baharat olarak kullanılan bitkilerden ekstrakte edilen uçucu yağların flukonazole dirençli ve flukonazole duyarlı Candida spp.'ye karşı in vitro etkinliği. Can J Microbiol. 2008; 54 (11):950–6. [ PubMed ] [ Google Akademik ]
      14. López P, Sánchez C, Batlle R, Nerín C. Aktif maddeler olarak uçucu yağlar kullanılarak esnek antimikrobiyal filmlerin geliştirilmesi. J Tarım Gıda Kimyası 2007; 55 :8814–24. [ PubMed ] [ Google Akademik ]
      15. Quale JM, Landman D, Zaman MM, Burney S, Sathe SS. Cinnamomum zeylanicum'un azol dirençli ve hassas Candida türlerine karşı in vitro aktivitesi ve oral kandidiyazis için tarçın pilot çalışması. Ben J Chin Med. 1996; 24 :103–9. [ PubMed ] [ Google Akademik ]
      16. Salma U, Saha SK, Sultana S, Ahmed SM, Haque SD, Mostaqim S. Etanolik tarçın ekstraktının ( Cinnamomum zeylanicum ) iki gıda kaynaklı patojene karşı antibakteriyel aktivitesi: Staphylococcus aureus ve Escherichia coli . Mymensingh Med J.2019 ; 28 :767–72. [ PubMed ] [ Google Akademik ]
      17. Kerekes EB, Vidács A, Takó M, Petkovits T, Vágvölgyi C, Horváth G, et al. Seçilmiş uçucu yağların ve ana bileşenlerin mono- ve polimikrobik bakteri kültürleri üzerindeki anti-biyofilm etkisi. mikroorganizmalar. 2019; 7 :E345. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      18. Abeysekera WPKM, Arachchige SPG, Abeysekera WKSM, Ratnasooriya WD, Medawatta HMUI. Seylan tarçın yaprağının ( Cinnamomum zeylanicum Blume) in vitro farklı olgunluk evrelerinin antioksidan ve glisemik düzenleyici özellikleri potansiyeli . Kanıta Dayalı Tamamlayıcı Alternatif Med. 2019; 2019 :2693795. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      19. Latti P, Ramanarayanan S, Prashant GM. Baharat özlerinin candida albicans'a karşı antifungal etkinliği : Bir in vitro çalışma. Indian J Community Med. 2019; 44 :77–80. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      20. Goel N, Rohilla H, Singh G, Punia P. Candida spp.'ye karşı tarçın yağı ve zeytinyağının antifungal aktivitesi . kan dolaşımı enfeksiyonlarından izole edilmiştir. J Clin Teşhis Arş. 2016; 10 C09–11. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
      21. Medina-Flores D, Ulloa-Urizar G, Camere-Colarossi R, Caballero-García S, Mayta-Tovalino F, del Valle-Mendoza J. Bixa orellana L.'nin (Achiote) Streptococcus mutans ve Streptococcus sanguinis'e karşı antibakteriyel aktivitesi . Asya Pasifik J Tropical Biomed. 2016; 6 :400–3. [ Google Akademik ]
      22. Camere-Colarossi R, Ulloa-Urizar G, Medina-Flores D, Caballero-García S, Mayta-Tovalino F, del Valle-Mendoza J. Myrciaria dubia'nın (Camu Camu) Streptococcus mutans ve Streptococcus sanguinis'e karşı antibakteriyel aktivitesi . Asya Pasifik J Tropical Biomed. 2016; 6 :740–4. [ Google Akademik ]

      Yorum yap


      • #4
        Üç uçucu yağ karışımının antibakteriyel, antifungal ve antiviral etkileri

        Amandine Brochot , 1 Angèle Guilbot , 1 Laïla Haddioui , 2 ve Christine Roques 2 , 3
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        1 PiLeJe, Paris Cedex 15, Fransa
        2 Fondeephar, Toulouse Cedex 09, Fransa
        3 Laboratoire de Génie Chimique UMR 5503, Faculté des Sciences Pharmaceutiques, Université Paul Sabatier, Toulouse, Fransa
        Amandine Brochot, E-posta: moc.etnasaneral@tohcorb.a .
        Sorumlu yazar.
        * Yazışma
        Amandine Brochot,
        PiLeJe, Paris Cedex 15, Fransa.
        E-posta: moc.etnasaneral@tohcorb.a , İlişkili Veriler

        Tamamlayıcı Malzemeler
        Git: Soyut


        Özellikle geleneksel antimikrobiyal ajanlara dirençli olanlar için yaygın patojenlere karşı etkili yeni ajanlara ihtiyaç duyulmaktadır. Uçucu yağlar (EO'lar) antimikrobiyal aktiviteleri ile bilinir. Et suyu mikrodilüsyon yöntemini kullanarak, (1) iki benzersiz Cinnamomum zeylanicum , Daucus carota , Eucalyptus globulus ve Rosmarinus officinalis EO karışımının (AB1 ve AB2; iki farklı tedarikçiden tarçın EO'ları) on dört Gram-pozitif ve - bazı antibiyotiğe dirençli suşlar da dahil olmak üzere test edilen negatif bakteri suşları. Minimal inhibitör konsantrasyonlar (MİK'ler), <%0,01 ila %6,00 v/v arasında minimum bakterisidal konsantrasyonlarla %0,01 ila %3 v/v aralığındaydı; (2) Cinnamomum zeylanicum karışımı, Daucus carota, Syzygium aromaticum, Origanum vulgare EO'lar, test edilen altı Candida suşuna karşı mantar öldürücüydü; MIC'ler %0,01 ila %0,05 v/v arasında ve %0,02 ila %0,05 v/v arasında minimum fungisit konsantrasyonları vardı. Karışım AB1 ayrıca H1N1 ve HSV1 virüslerine karşı da etkiliydi. H1N1'e ve özellikle S. aureus ve S. pneumoniae'ye karşı bu ikili aktivite ile AB1, influenza ve postinfluenza bakteriyel pnömoni enfeksiyonlarını tedavi etmek için ilginç olabilir. Bu karışımlar, antimikrobiyal ilaçlara dirençli mikroorganizmaların neden olduğu enfeksiyonlar da dahil olmak üzere yaygın enfeksiyonlarla mücadele etmek için klinik uygulamada çok yararlı olabilir.

        Anahtar Kelimeler: antimikrobiyaller, E. coli , Mantarlar, enfeksiyon, virüsler
        Git: 1. Giriş


        Antimikrobiyal direnç, bakteri, mantar ve virüslerin neden olduğu sürekli artan bir dizi enfeksiyonun etkili tedavisi için ciddi bir tehdit oluşturmaktadır. Dünya genelinde antibiyotik direnci artıyor. Örneğin, Escherichia coli , Klebsiella pneumoniae , Streptococcus pneumoniae , DSÖ Antimikrobiyal Direnç Küresel Sürveyans Raporuna (WHO, 2014 ) veri sağlayan çoğu ülkede %50'yi aşan antibiyotik duyarlılığında azalma bildirmiştir. Candida albicans'ın yaygın antifungal ajanlara karşı artan direnç göstermesiyle kandidiyazis de önemli ölçüde sorunlu hale geldi (Goncalves, Souza, Chowdhary, Meis, & Colombo, 2016 ; Hawser & Douglas, 1995 )). Yeni bir H1N1 influenza viral suşunun son pandemisi ve yaygın olarak kullanılan anti-herpes simpleks ilaçlara dirençli yeni ortaya çıkan suşlar da viral enfeksiyonları önlemek ve tedavi etmek için etkili yaklaşımları belirleme ihtiyacını vurgulamaktadır (Boivin, 2013; James & Prichard , 2014 ) .

        Bu artan direnç, yeni antimikrobiyal ajanların geliştirilmesi ihtiyacını doğurmuştur. Çalışmalar, bireysel EO'ların ve bunların terpenler ve terpenoidler (1,8-sineol, karvakrol) ve aromatik bileşikler (sinnamaldehit ve öjenol) dahil olmak üzere izole edilmiş bileşiklerinin çok çeşitli patojenlere karşı antimikrobiyal aktiviteye sahip olduğunu gösterdiğinden, uçucu yağlar (EO'lar) iyi adaylardır. , çeşitli aktivite spektrumları ile (Bassole & Juliani, 2012 ; Friedman, Henika ve Mandrell, 2002 ; Jantan, Karim Moharam, Santhanam ve Jamal, 2008). EO'ların antimikrobiyal etkileri, hücre zarı hasarına neden olan bileşimleri ve sitotoksik etkileri ile bağlantılıdır. EO bileşikleri lipofiliktir ve bu nedenle hücre duvarı ve sitoplazmik zardan geçer. Polisakkarit, yağ asidi ve fosfolipid tabakalarının yapısını bozarak zarı geçirgen hale getirirler (Bakkali, Averbeck, Averbeck ve Idaomar, 2008 ). Ne yazık ki, EO'lar spesifik olarak patojenleri hedeflemez; ayrıca ökaryotik hücreleri tersine çevrilebilir veya geri döndürülemez bir şekilde etkileyebilirler (Carson, Hammer ve Riley, 2006 ). Aşırı durumlarda, EO sitotoksisitesi apoptoz, nekroz ve organ yetmezliğine yol açabilir (Tisserand & Young, 2013). Bu nedenle, EO'lar, mevcut olduğunda ilgili otoriteler tarafından tanımlanan günlük alım limitleri dahilinde dikkatli bir şekilde kullanılmalıdır (EMEA ve HMPC 2010 , 2011 ; FAO ve WHO 2003 ).

        Her birinin spesifik aktivitesi dikkate alınarak üç farklı EO karışımı formüle edildi. İlk ikisi (AB1 ve AB2), Cinnamomum zeylanicum , Daucus carota , Eucalyptus globulus ve Rosmarinus officinalis'ten elde edilen EO'ları içeriyordu , bu sadece tarçın EO'larının iki farklı tedarikçi tarafından sağlanmasıyla farklılık gösteriyordu. Bu EO'lar, daha önce yayınlanmış çalışmalarda tek tek veya çiftler halinde gözlemlenen antibakteriyel etkileri nedeniyle seçilmiştir (inceleme için bkz. Bassole & Juliani, 2012 ). Eucalyptus globulus ve Cinnamomum Zeylanicum EO'larının da antiviral aktiviteye sahip olduğu bildirilmiştir (Astani, Reichling, & Schnitzler, 2010; Cermelli, Fabio, Fabio ve Quaglio, 2008 ; Vimalanathan ve Hudson, 2014 ). Üçüncü harman (AF), antifungal aktiviteleriyle bilinen Cinnamomum zeylanicum , Daucus carota , Syzygium aromaticum , Origanum vulgare'den EO'lar içeriyordu (Khan & Ahmad, 2011 ; Pinto, Vale‐Silva, Cavaleiro, & Salgueiro, 2009 ; Tavares ve et. al., 2008 ; Zore, Thakre, Jadhav ve Karuppayil, 2011 ).

        AB1 ve AB2'nin antibakteriyel aktivitesi, antibiyotik direnci olan veya olmayan çeşitli Gram-pozitif ve Gram-negatif bakterilere karşı in vitro olarak değerlendirildi, AB1, antiviral aktivite için değerlendirildi ve AF, farklı Candida suşlarına karşı aktivite açısından değerlendirildi.

        Git: 2. Malzemeler ve Yöntemler

        2.1. Uçucu yağ karışımları


        BAKTARİ İÇİN KARIŞIM; AB1 ve AB2 karışımları eşit parçalardan (her biri %3,52) Eucalyptus globulus CT cineol (yaprak) ve Cinnamomum zeylanicum CT cinnamaldehit (kabuk), %3,00 Rosmarinus officinalis CT cineol (yaprak), %1,04 Daucus carota CT carotol ( tohumu) ve Camelina sativa yağının (tohum) %88.90'ı.

        MANTAR İÇİN KARIŞIM; Karışım AF, Cinnamomum zeylanicum CT cinnamaldehyde (kabuk), Syzygium aromaticum CT eugenol (Eş anlamlı: Eugenia caryophyllus Sprengel, karanfil) ve Origanum vulgare CT carvacol (hava parçaları), %1,04 Daucus carota CT carotol'den eşit parçalar (her biri %3,53) içeriyordu (tohum) ve Camelina sativa yağının (tohum) %88.35'i.

        Bontoux'dan (Saint-Aubin-sur-l'Ouvèze, Fransa) AB1'deki C. zeylanicum hariç tüm EO'lar Golgemma (Espéraza, Fransa) tarafından sağlandı . Camelina sativa yağı Polaris (Pleuven, Fransa) tarafından sağlandı. Karışımlar kullanılana kadar 4°C'de saklandı.


        EO ekstraksiyon yöntemi ve bileşimi, Destekleyici bilgi olarak sağlanır. 2.2. Bakteriyel ve mantar suşları

        American Type Culture Collection'dan (ATCC; Molsheim, Fransa), Pasteur Institute Collection'dan (CIP; Paris, Fransa) veya klinik örneklerden (Escherichia coli UTI89 ve genişletilmiş spektrumlu beta-laktamaz pozitif [ESBL]) on dört bakteri suşu test edildi. Dört Gram pozitif suş vardı: Streptococcus pyogenes CIP 5641T, Streptococcus pneumoniae CIP 104471, Listeria monocytogenes CIP 82110T ve Staphylococcus aureus MRSA ATCC 33591; ve on Gram negatif suş: Pseudomonas aeruginosa CIP 103467, Proteus mirabilis CIP 103181T, Escherichia coli ESBL, Escherichia coli UTI 89,Klebsiella pneumoniae CIP 8291T, Salmonella typhimurium CIP 6062T, Yersinia enterocolitica CIP 8027T, Bacteriodes fragilis ATCC 25285, Haemophilus influenza IP 102514 ve Branhamella catarrhalis CIP 7321T. Pseudomonas aeruginosa CIP 103467, Staphylococcus aureus MRSA ATCC 3359 ve Escherichia coli ESBL, antibiyotiklere karşı belirgin doğal veya kazanılmış dirençleri nedeniyle seçildi.

        Aşağıdaki altı mantar suşu şu şekilde test edilmiştir: Candida albicans DSM 1386, Candida glabatra DSM 11226, Candida tropicalis IP 2148.93, Candida albicans F26, Candida albicans F35 ve Candida albicans F78. İkisi Deutsche Sammlung von Mikrooganismen und Zellkulturen'den (DSM), biri Pasteur Enstitüsü'nden (IP) ve üçü klinik izolatlardı (F). 2.3. Antibakteriyel ve antifungal testler

        Suşlar -80°C'de korundu ve P. aeruginosa CIP 103467, P. mirabilis CIP 103181T, E. coli UTI 89 için 36°C'de aerobik koşullar altında (1) tripcase soy agar (Biomérieux, Craponne, Fransa) üzerinde alt kültürlendi, S. thyphimurium CIP 6062T, Y. enterocolitica CIP 8027T, K. pneumoniae CIP 8291T, S. aureus MRSA ATCC 33591 ve E. coli GSBL; (2) S. pyogenes CIP 5641T, S. pneumoniae CIP 104471, L. monocytogenes CIP82110T için 36°C'de CO2 veya anaerobik koşullar altında %5 koyun eritrositli (Biomérieux) Columbia agar ,B. fragilis ATCC 25285, H. influenza IP 102514 ve B. catarrhalis CIP 7321T; ve (3) mayalar için 30°C'de aerobik koşullar altında Sabouraud agar (Biomérieux). Süspansiyonlar, bakteriler için 10 8 CFU / ml ve mayalar için 10 7 CFU / ml'lik bir nihai aşılama elde etmek üzere steril damıtılmış su içinde hazırlandı .

        AB1 ve AB2 karışımları, antibakteriyel aktiviteleri açısından ve AF, antifungal aktivitesi için önceden bildirilen bir mikroyönteme göre test edildi (Ibrahim ve diğerleri, 2012 ). Mikroorganizma duyarlılığı için bir kontrol olarak bakteriler için amoksisilin ve mayalar için amfoterisin B ile testler de yapıldı.

        Her harman, kültür ortamındaki mikro titre plakalarında iki katlı adımlar kullanılarak seyreltildi: (1) P. mirabilis CIP 103181T, E. coli UTI 89, S. typhimurium CIP 6062T, Y. enterocolitica CIP için Muller Hinton (MH) besiyeri (Biomérieux) 8027T, K. pneumoniae CIP 8291T, S. aureus MRSA ATCC 33591, P. aeruginosa CIP 103467 ve E. coli ESBL; (2) S. pyogenes CIP 5641T, S. pneumoniae CIP 104471, L. monocytogenes CIP 82110T için 36°C'de CO2 veya anaerobik koşullar altında %10 fetal dana serumu (PAN-Dutscher) ile takviye edilmiş MH brot ,B. fragilis ATCC 25285 ve B. catarrhalis CIP 7321T; (3) H. influenza IP 102514 için %10 fetal buzağı serumu (PAN-Dutscher) ve %1 Polyvitex (Biomérieux) ile desteklenmiş MH brot ; ve (4) 1. sütundan 10. sütuna kadar mayalar için Sabouraud (Biomérieux). Sütun 11 ve 12, sterilite kontrolü (ürün veya mikroorganizmalar olmadan) ve büyüme kontrolü (ürün olmadan ve mikroorganizmalar ile) için muhafaza edildi. İki katlı seyreltmeler, testlerin yürütülmesine izin veren emülsiyonlara yol açtı. Aşılama, her bir süspansiyon için yaklaşık 1.5 ul'lik bir hacim altında çok noktalı bir inokülatör (Denley) kullanılarak gerçekleştirildi ve mikroplakalar yukarıda tarif edildiği gibi inkübe edildi.

        Minimal inhibe edici konsantrasyon (MIC), test bileşiğinin, bileşiksiz kontrol ile karşılaştırıldığında hiçbir makroskopik hücresel büyüme belirtisinin saptanmadığı konsantrasyonu olarak tanımlandı. Test bileşiklerinin seri dilüsyonlarının mevcudiyetinde 36°C'de 24 saat inkübasyondan sonra bakteriler ve 30°C'de 24 saat inkübasyondan sonra mayalar için belirlendi. Bakteriler (MBC) veya mantarlar (MFC) için minimum mikrop öldürücü konsantrasyonlar, alt kültürleme üzerine kontrol ile karşılaştırıldığında hiçbir makroskopik hücresel büyüme belirtisinin saptanmadığı bileşik konsantrasyonu olarak tanımlandı. Bu konsantrasyonlar, bakteri ve mantar suşları inkübe edildikten sonra karşılık gelen agar plakalarında (MH agar veya katkılı MH veya Sabouraud agar) alt kültürleme yapılarak belirlendi.

        Tüm deneyler, CA-SFM yönergelerine dayalı bir mikro yöntem analizi kullanılarak her konsantrasyonda iki kopya halinde gerçekleştirildi. 2.4. Viral suşlar ve antiviral aktivite


        AB1'in antiviral aktivitesi influenza A H1N1 ATCC VR-R 1520 ve oral herpes simpleks HSV1 ATCC VR-1383 ile test edilmiştir. Testler NF EN 14476'ya (AFNOR 2015 ) göre yapılmıştır . H1N1 suşu, EMEM ortamında (PAN-Dutscher) MDCK hücreleri (CCL-34, ATCC) üzerinde ve HSV1 VERO hücreleri üzerinde amplifiye edildi. Temiz koşullar altında (%1 PBS, Sigma Aldrich) müdahale eden madde ile test bileşiğine virüs süspansiyonu eklendi. Bu karışım, 60 dakika ± 10 için 35°C ± 1'de tutuldu. Aktivite, bir elek filtresi (Sephadex LH 20) kullanılarak moleküler eleme yöntemiyle durduruldu. Ürünün nötralizasyonu, 1/10 dilüsyonda Sephadex'ten geçirilerek doğrulanmıştır.

        Süspansiyondaki hücreler üzerinde virüs titrasyonu, mikroplakalarda gerçekleştirildi. Cam tüplerde buz soğukluğunda 30 dakika boyunca dört faktörlü bir seyreltme serisi hazırlandı. Seyreltme daha sonra, hücre süspansiyonu her oyuğa eklenmeden önce mikro titre plakalarına aktarıldı. Viral sitopatik etki, 4 günlük inkübasyondan sonra ters çevrilmiş bir mikroskop altında okundu ve aşağıdaki formüle göre Spearman-Kärber yöntemiyle (Lorenz & Bogel, 1973 ) belirlendi:

        %50 bitiş noktasının negatif logaritması = kullanılan en yüksek virüs konsantrasyonunun negatif logaritması – ([Her dilüsyonda etkilenen % toplamı/100 - 0,5] X [dilüsyon logu])

        Virüs enfektivitesindeki azalma, tedaviden önce ve sonra log virüs titrelerinin farkından hesaplandı. Log redüksiyonu ≥4 olduğunda ürünün virüsidal olduğu kabul edildi.

        Git: 3. Sonuçlar ve tartışma

        3.1. AB1 ve AB2'nin antibakteriyel aktivitesi


        AB1 ve AB2 karışımları test edilen tüm Gram-pozitif ve Gram-negatif bakterilere karşı hem bakteriyostatik hem de bakterisidal etkiler sergiledi; MIC'ler %0,01 ila %3 v/v ve MBC'ler <%0,01 ila %6 v/v (Tablo 1). Bu bulgular, karışımlarımızın türetildiği aynı bitkilerden elde edilen EO'ları kullanan ve aynı bakteri türlerine karşı test edilen, ancak çalışmamızda test edilenlerden farklı suşlar kullanan önceki çalışmalarla tutarlıdır (Rokbeni ve diğerleri, 2013 ; Salari, Amine , Shirazi, Hafezi ve Mohammadypour, 2006 ; Ünlü, Ergene, Ünlü, Zeytinoğlu ve Vural, 2010 ; Wang, Li, Luo, Zu ve Efferth, 2012 ). AB1 ve AB2 karışımları antibiyotiğe dirençli suşlar Pseudomonas aeruginosa CIP 103467, Staphylococcus aureus MRSA ATCC 3359 ve Escherichia coli ESBL'ye karşı etkiliydi (Tablo1). Ancak, P. aeruginosa CIP 103467, test edilen karışımlara karşı en az hassas olandı (MBC: AB2 için %3 v/v ve AB1 için %6 v/v). P. aeruginosa'nın doğal direnci daha önce bildirildiği için bu sonuç şaşırtıcı değildi (Longbottom, Carson, Hammer, Mee ve Riley, 2004 ; Papadopoulos, Carson, Chang ve Riley, 2008 ). Mekanizmaların bir kombinasyonu bu bakteriyi korur. Dış zar özellikle ilaçlara karşı geçirimsizdir ve porine bağımlı inhibisyon ve dışarı akış mekanizmalarına sahiptir (Papadopoulos ve diğerleri, 2008 ). P. aeruginosa, karışımlarımızda yüksek seviyelerde bulunan bir monoterpen olan 1,8-sineol gibi bileşikleri ekstrüde eden bir çoklu ilaç akış sistemi kullanırR. officinalis EO ve E. globulus EO'da >%80; bkz. Destekleyici bilgiler). tablo 1


        AB1 ve AB2 karışımları için minimum inhibitör konsantrasyonlar (MIC'ler), minimum bakterisidal konsantrasyonlar (MBC'ler) ve MBC/MIC oranı (% v/v)
        Gram pozitif
        Staphylococcus aureus MRSA ATCC 33591 a 0,38 0,38 0,38 0,75 1.00 2.00
        Streptococcus pyogenes CIP 5641T 0.09 0.19 0.19 0.19 2.00 1.00
        Streptococcus pneumoniae CIP 104471 0,38 0,05 0,38 0.19 1.00 4.00
        Listeria monocytogenes CIP82110T 0,38 0,38 0,38 0,38 1.00 1.00
        gram negatif
        Pseudomonas aeruginosa CIP 103467 bir 3.00 3.00 6.00 3.00 2.00 1.00
        Proteus mirabilis CIP 103181T 0,75 0,38 0,75 0,38 1.00 1.00
        Escherichia coli GSBL Klinik a 0,75 0,38 1.50 0,75 2.00 2.00
        Escherichia coli üropatojen İYE 89 0,38 0,38 1.50 1.50 4.00 4.00
        Klebsiella pneumoniae CIP 8291T 0,38 0,38 0,75 0,75 2.00 2.00
        Salmonella typhimurium CIP 6062T 0,75 0,75 3.00 0,75 4.00 1.00
        Yersinia enterocolitica CIP 8027T 0.09 0.02 0,38 0,05 4.00 2.50
        Fragilis bakterisi ATCC 25285 0.01 0.02 0.01 0.09 1.00 4.50
        Haemophilus influenza IP 102514 – 0.09 – 0.09 – 1.00
        Branhamella catarrhalis CIP 7321T – <0,01 – <0,01 – 1.00
        Ayrı bir pencerede aç
        Antibiyotiklere dirençli bir suş.
        Gram pozitif bakteriler arasında, AB1 ve AB2'nin her ikisi de S. pyogenes'e karşı en düşük MBC'yi gösterdi (AB1 için %0,19 ve AB2 için %0,02 v/v). Gram-negatif bakteriler için AB1, B. fragilis'e (MBC: %0,01 v/v) karşı en düşük MBC'yi ve B. catarrhalis'e (MBC: < %0,01 v/v; Tablo) karşı AB2'yi gösterdi.1). Gram-pozitif ve Gram-negatif bakteriler arasında hassasiyet açısından belirgin bir fark gözlemlemedik, sonuçlar EO'ların veya bazı bileşenlerinin birleşik etkisine atfedilebilir. Literatürden elde edilen sonuçlar çelişkilidir. Gram-negatif bakterilerin bireysel EO'lara karşı daha duyarlı olduğu bildirilmiştir (Kim, Marshall, & Wei, 1995 ). Bununla birlikte, diğer çalışmalar, EO'ların Gram-pozitif bakterilere karşı daha etkili olduğunu veya belirli EO'lar için seçicilik eksikliğini bulmuştur (Hammer, Carson, & Riley, 1999 ; Prabuseenivasan, Jayakumar, & Ignacimuthu, 2006 ).

        MBC/MIC oranları temelinde, iki karışım için E. coli UTI89 ve Y. enterocolitica ve AB1 ve S için S.thyphimurium dışında test edilen çoğu suş için AB1 ve AB2 için bakterisit etki doğrulandı (oranlar ≤ 2). AB2 için pneumoniae ve B. fragilis (Tablo 1). Karışımlar arasındaki tutarsızlıklar, iki farklı tarçın EO'sunun farklı kimyasal bileşimi ile açıklanabilir. İki tarçın EO'sunun kemotipleri aynı olmasına rağmen (CT cinnamadehyde), tarçın EO'daki sinnamaldehit konsantrasyonu AB2'de AB1'e göre neredeyse iki kat daha yüksekti ve öjenol konsantrasyonu AB2'de ~%2'ye kıyasla AB1'de >%30'du. 3.2. AF'nin mantar önleyici etkisi


        Karışım AF, %0,01 ila %0,05 v/v arasında değişen MIC'ler ve %0,02 ila %0,05 v/v arasında minimum fungisidal konsantrasyonlar (MFC'ler) ile test edilen tüm Candida suşlarına karşı fungistatik ve fungisidal aktivitelere sahipti (Tablo2). Test edilen tüm suşlar için MFC/MIC oranı ≤2 idi (yaygın antifungal ilaçlara spesifik direnç olmadan). Bu sonuçlar, C. zeylanicum , E. caryophyllus ve O. vulgare'den elde edilen EO'ların ve bunların ana bileşiklerinin (cinnamaldehyde, eugenol ve carvacrol) C. albicans ve diğer Candida türlerine karşı fungisidal olduğunu gösteren diğer çalışmalarla tutarlıdır. yaygın antifungal ilaçlara dirençli (flukonazol veya amfoterisin B; Tampieri ve diğerleri, 2005 ; Pinto ve diğerleri, 2006 ; Khosravi ve diğerleri , 2011 ; Shreaz ve diğerleri, 2011). Tablo 2


        Karışım AF için minimum inhibitör konsantrasyonlar (MIC'ler), minimum fungisidal konsantrasyonlar (MFC'ler) ve MFC/MIC oranı (% v/v)
        Candida albicans DSM1386 0.02 0.02 1.00
        Candida albicans F26 0.02 0.02 1.00
        Candida albicans F35 0.02 0.02 1.00
        Candida albicans F78 0.02 0.02 1.00
        Candida tropikalis IP 2148.93 0.01 0.02 2.00
        Candida glabatra DSM 11226 0,05 0,05 1.00
        Ayrı bir pencerede aç 3.3. AB1'in antiviral aktivitesi


        AB1 Karışımı, H1N1 ve HSV1 için viral birimleri önemli ölçüde azalttı. H1N1 için, 60 dakikalık temas süresi ile %1 AB1 ile %99'dan (>2 log) daha büyük bir azalma ve 60 dakika sonra %80 ve %40 AB1 ile %99,99'dan (>4 log) daha fazla bir azalma gözlendi. HSV1 için, 60 dakikalık temas süresinin ardından %1 ve %40 AB1 ile %99'dan daha büyük bir azalma ve 60 dakika boyunca %80 AB1'de %99,99'luk bir azalma elde edildi. Bu sonuçlar, E. globulus ve C. zeylanicum EO'larının H1N1 ve HSV1 üzerinde antiviral aktiviteye sahip olduğunu gösteren önceki çalışmalarla tutarlıdır (Astani ve diğerleri, 2010 ; Vimalanathan & Hudson, 2014 )). Örneğin, okaliptüs EO ve bileşikleri 1,8 sineol ve β-karyofilen, doğrudan serbest virüs parçacıklarını etkisiz hale getirerek bir anti-HSV1 aktivitesi sergiler ve konakçı hücrelere giriş için gerekli olan virion zarf yapılarına müdahale edebilir (Astani, Reichling, & Schnitzler, 2011 ; Astani ve diğerleri, 2010 ). Yaygın olarak kullanılan antiviral ilaçlar (örn. asiklovir ve gansiklovir) DNA polimerazları inhibe eder. DNA polimerazlar dışındaki viral hedefleri olan maddelerin tanımlanması, direnci önlemek için özellikle önemlidir.

        Biberiye, portakal, karanfil, tarçın ve okaliptüs EO'larının (On guard Wild ™ ) tescilli bir karışımı ile gerçekleştirilen daha önce yayınlanmış bir çalışmada , etkinlik H1N1'e karşı gösterildi, ancak bakterilere karşı test edilmedi (Wu ve diğerleri, 2010 ). Çalışmamızda AB1'in hem virüslere hem de bakterilere, özellikle de grip sonrası pnömoniden sorumlu iki bakteri olan H1N1 virüsü, S. aureus ve S. pneumoniae'ye karşı etkili olduğu kanıtlanmıştır (Chung & Huh, 2015 ). Bu ikili aktivite, influenza ve ayrıca influenza ile ilişkili ölümlerin önde gelen nedenlerinden biri olan influenza sonrası bakteriyel pnömoni enfeksiyonlarını tedavi etmek için özellikle ilgi çekici olabilir.

        Bu in vitro çalışma, C. zeylanicum , D. carota , E. globulus ve R. officinalis EO'larının AB1 ve AB2 karışımlarının Gram-pozitif ve Gram-negatif bakterilere karşı oldukça antimikrobiyal aktiviteye sahip olduğunu göstermektedir. Karışım AB1 ayrıca virüslere karşı da etkilidir. AF içeren C. zeylanicum , D. carota , S. aromaticum ve O. vulgare EO'larının harmanı, oldukça antifungal aktiviteye sahipti. Bu, bu karışımların yaygın, akut ve kronik insan enfeksiyonlarında yer alan mikroorganizmalarla mücadelede etkili olabileceğini düşündürmektedir. Bu in vitro sonuçları etkinlik açısından doğrulamak ve ayrıca güvenliklerini değerlendirmek için klinik ortamlarda daha fazla araştırmaya ihtiyaç duyulacaktır.

        Git: Çıkar çatışması


        Amandine Brochot ve Angèle Guilbot, PiLeJe'de sırasıyla Proje yöneticisi ve Bilimsel departman yöneticisidir. Fonderephar Laboratuvarı'ndan Laïla Haddioui ve Christine Roques, PiLeJe için çalışmayı gerçekleştirdi.


        Git: Destek Bilgisi


        Ek veri dosyası için buraya tıklayın. (20K, docx)
        Git: teşekkürler


        Yazarlar, Claude Blondeau (PiLeJe) ve AmyWhereat (Speak the Speech Consulting) tarafından sağlanan yazım ve editörlük yardımını kabul ederler.

        Git: notlar


        Brochot A, Guilbot A, Haddioui L, Roques C. Üç uçucu yağ karışımının antibakteriyel, antifungal ve antiviral etkileri . MikrobiyolojiAçık . 2017; 6 :e459 https://doi.org/10.1002/mbo3.459 [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]

        Git: Referanslar
        • AFNOR (2015). Norm NF EN 14476 Antiseptikler ve dezenfektanlar kimyevi maddeler - İnsan tıbbında kullanılan antiseptikler ve dezenfektanlar için asıltı virüs öldürücü niceliksel madde .
        • Astani, A. , Reichling, J. ve Schnitzler, P. (2010). Uçucu yağlardan elde edilen seçilmiş monoterpenlerin antiviral aktivitesi üzerine karşılaştırmalı çalışma . Fitoterapi Araştırması , 24 , 673–679. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Astani, A. , Reichling, J. ve Schnitzler, P. (2011). Uçucu yağlardan izole edilmiş bileşiklerin antiviral aktiviteleri için tarama . Kanıta Dayalı Tamamlayıcı ve Alternatif Tıp: ECAM , 2011 , 253643. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Bakkali, F. , Averbeck, S. , Averbeck, D. ve Idaomar, M. (2008). Uçucu yağların biyolojik etkileri – bir inceleme . Gıda ve Kimyasal Toksikoloji , 46 , 446–475. [ PubMed ] [ Google Akademik ]
        • Bassole, IH ve Juliani, HR (2012). Uçucu yağlar kombinasyon halinde ve antimikrobiyal özellikleri . Moleküller , 17 , 3989–4006. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Boivin, G. (2013). İnfluenza virüsleri için antiviral direncin tespiti ve yönetimi . Grip ve Diğer Solunum Virüsleri , 7 , 18–23. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Carson, CF , Hammer, KA ve Riley, TV (2006). Melaleuca alternifolia (Çay Ağacı) yağı: Antimikrobiyal ve diğer tıbbi özelliklerin gözden geçirilmesi . Klinik Mikrobiyoloji İncelemeleri , 19 , 50–62. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Cermelli, C. , Fabio, A. , Fabio, G. ve Quaglio, P. (2008). Okaliptüs esansiyel yağının solunum bakteri ve virüsleri üzerindeki etkisi . Güncel Mikrobiyoloji , 56 , 89–92. [ PubMed ] [ Google Akademik ]
        • Chung, DR ve Huh, K. (2015). Yeni pandemik influenza A (H1N1) ve toplumla ilişkili metisiline dirençli Staphylococcus aureus pnömonisi . Anti-Enfektif Tedavi Uzman İncelemesi , 13 , 197–207. [ PubMed ] [ Google Akademik ]
        • Avrupa İlaç Ajansı (EMA) Beşeri İlaçların Değerlendirilmesi, Bitkisel tıbbi ürünler Komitesi (HMPC) (2010). Rosmarinus officinalis l., aetheroleum hakkında topluluk bitkisel monografisi . http://www.ema.europa.eu/docs/en_GB/...C500101493.pdf . Son erişim: 23 Aralık 2016.
        • Avrupa İlaç Ajansı (EMA) Beşeri İlaçların Değerlendirilmesi, Bitkisel tıbbi ürünler Komitesi (HMPC) (2011). Cinnamomum verum JS Presl, korteks ve kortikis aetheroleum hakkında değerlendirme raporu . http://www.ema.europa.eu/docs/en_GB/...C500110090.pdf . Son erişim: 23 Aralık 2016
        • Birleşmiş Milletler Gıda ve Tarım Örgütü (FAO) ve Dünya Sağlık Örgütü (WHO) (2003). Gıda Katkı Maddeleri Ortak FAO/WHO Uzman Komitesi (JECFA) . http://www.fao.org/food/food-safety-...vice/jecfa/en/ . Son erişim: 23 Aralık 2016.
        • Friedman, M., Henika, PR ve Mandrell, RE (2002). Bitki esansiyel yağlarının ve izole edilmiş bazı bileşenlerinin Campylobacter jejuni, Escherichia coli, Listeria monocytogenes ve Salmonella enterica'ya karşı bakterisidal aktiviteleri . Journal of Food Protection , 65 , 1545–1560. [ PubMed ] [ Google Akademik ]
        • Goncalves, SS , Souza, AC , Chowdhary, A. , Meis, JF ve Colombo, AL (2016). Candida ve Aspergillus'ta antifungal direncin epidemiyolojisi ve moleküler mekanizmaları . Mikozlar , 59 , 198–219. [ PubMed ] [ Google Akademik ]
        • Hammer, KA , Carson, CF ve Riley, TV (1999). Uçucu yağların ve diğer bitki özlerinin antimikrobiyal aktivitesi . Journal of Applied Microbiology , 86 , 985–990. [ PubMed ] [ Google Akademik ]
        • Hawser, SP ve Douglas, LJ (1995). Candida albicans biyofilmlerinin in vitro antifungal ajanlara direnci . Antimikrobiyal Ajanlar ve Kemoterapi , 39 , 2128–2131. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • İbrahim, H. , Furiga, A. , Najahi, E. , Pigasse, HC , Nallet, JP , Roques, C. , … Nepveu, F. (2012). İndolon-N-oksit türevlerinin antibakteriyel, antifungal ve antileishmanial aktiviteleri . Antibiyotik Dergisi , 65 , 499–504. [ PubMed ] [ Google Akademik ]
        • James, SH ve Prichard, MN (2014). Herpes simpleks virüsü enfeksiyonları için mevcut ve gelecekteki tedaviler: Etki mekanizması ve ilaç direnci . Virolojide Güncel Görüş , 8 , 54–61. [ PubMed ] [ Google Akademik ]
        • Jantan, I. b. , Karim Moharam, BA , Santhanam, J. ve Jamal, J.A. (2008). Sekiz sinnamomun esansiyel yağlarının kimyasal bileşimi ve antifungal aktivitesi arasındaki ilişki . türler _ Farmasötik Biyoloji , 46 , 406–412. [ Google Akademik ]
        • Khan, MS ve Ahmad, I. (2011). Uçucu yağların antifungal aktivitesi ve ilaca dirençli Aspergillus fumigatus ve Trichophyton rubrum suşlarına karşı flukonazol ile sinerjisi . Uygulamalı Mikrobiyoloji ve Biyoteknoloji , 90 , 1083–1094. [ PubMed ] [ Google Akademik ]
        • Khosravi, AR , Shokri, H. , Kermani, S. , Dakhili, M. , Madani, M. ve Parsa, S. (2011). Artemisia sieberi ve Origanum vulgare esansiyel yağlarının vulvovajinal kandidiyazlı hastalardan elde edilen Candida glabrata izolatlarına karşı antifungal özellikleri . Journal de Mycologie Médicale , 21 , 93–99. [ Google Akademik ]
        • Kim, J., Marshall, MR ve Wei, C. (1995). Bazı uçucu yağ bileşenlerinin gıda kaynaklı beş patojene karşı antibakteriyel aktivitesi . Tarım ve Gıda Kimyası Dergisi , 43 , 2839–2845. [ Google Akademik ]
        • Longbottom, CJ , Carson, CF , Hammer, KA , Mee, BJ ve Riley, TV (2004). Pseudomonas aeruginosa'nın Melaleuca alternifolia (çay ağacı) yağına toleransı , dış zar ve enerjiye bağlı hücresel süreçlerle ilişkilidir . Journal of Antimicrobial Chemotherapy , 54 , 386–392. [ PubMed ] [ Google Akademik ]
        • Lorenz, RJ ve Bogel, K. (1973). Kuduzda laboratuvar teknikleri: Hesaplama yöntemleri . Monograf Serisi. Dünya Sağlık Örgütü , 23 , 321–335. [ PubMed ] [ Google Akademik ]
        • Papadopoulos, CJ , Carson, CF , Chang, BJ ve Riley, TV (2008). Pseudomonas aeruginosa'nın MexAB-OprM akış pompasının çay ağacı ( Melaleuca alternifolia ) yağına ve bunun monoterpen bileşenleri olan terpinen-4-ol, 1,8-sineol ve alfa-terpineole toleranstaki rolü . Uygulamalı ve Çevresel Mikrobiyoloji , 74 , 1932–1935. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • Pinto, E. , Pina-Vaz, C. , Salgueiro, L. , Goncalves, MJ , Costa-de-Oliveira, S. , Cavaleiro, C. , … Martinez-de-Oliveira, J. (2006). Thymus pulegioides esansiyel yağının Candida , Aspergillus ve dermatofit türleri üzerindeki antifungal aktivitesi . Journal of Medical Microbiology , 55 , 1367–1373. [ PubMed ] [ Google Akademik ]
        • Pinto, E. , Vale-Silva, L. , Cavaleiro, C. ve Salgueiro, L. (2009). Syzygium aromaticum'dan elde edilen karanfil esansiyel yağının Candida , Aspergillus ve dermatofit türleri üzerindeki antifungal aktivitesi . Journal of Medical Microbiology , 58 , 1454–1462. [ PubMed ] [ Google Akademik ]
        • Prabuseenivasan, S. , Jayakumar, M. ve Ignacimuthu, S. (2006). Bazı bitki esansiyel yağlarının in vitro antibakteriyel aktivitesi . BMC Tamamlayıcı ve Alternatif Tıp , 6 , 39. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
        • Rokbeni, N. , M'rabet, Y. , Dziri, S. , Chaabane, H. , Jemli, M. , Fernandez, X. ve Boulila, A . (2013). Tunus Daucus carota L.'nin doğal popülasyonlarının uçucu yağlarının kimyasal bileşiminin ve antimikrobiyal aktivitesinin değişimi . ( Apiaceae ) _ Kimya ve Biyoçeşitlilik , 10 , 2278–2290. [ PubMed ] [ Google Akademik ]
        • Salari, MH , Amine, G. , Shirazi, MH , Hafezi, R. ve Mohammadypour, M. (2006). Eucalyptus globulus yaprak ekstraktının solunum yolu bozukluğu olan hastaların örneklerinden izole edilen patojenik bakteriler üzerindeki antibakteriyel etkileri . Klinik Mikrobiyoloji ve Enfeksiyon , 12 , 194–196. [ PubMed ] [ Google Akademik ]
        • Shreaz, S. , Bhatia, R. , Khan, N. , Muralidhar, S. , Basir, SF , Manzoor, N. ve Khan, LA (2011). Baharat yağı sinnamaldehit, flukonazole dirençli klinik izolatlara karşı güçlü antikandidal aktivite sergiler . Fitoterapi , 82 , 1012–1020. [ PubMed ] [ Google Akademik ]
        • Tampieri, MP , Galuppi, R. , Macchioni, F. , Carelle, MS , Falcioni, L. , Cioni, PL ve Morelli, I. (2005). Candida albicans'ın seçilmiş uçucu yağlar ve bunların ana bileşenleri tarafından inhibisyonu . Mikopatoloji , 159 , 339–345. [ PubMed ] [ Google Akademik ]
        • Tavares, AC , Goncalves, MJ , Cavaleiro, C. , Cruz, MT , Lopes, MC , Canhoto, J. ve Salgueiro, LR (2008). Daucus carota subsp esansiyel yağı . halophilus : Kompozisyon, antifungal aktivite ve sitotoksisite . Journal of Ethnopharmacology , 119 , 129–134. [ PubMed ] [ Google Akademik ]
        • Tisserand, R. ve Young, R. (2013). Uçucu Yağ Güvenliği: Sağlık Profesyonelleri İçin Bir Kılavuz s. 23–38. Birleşik Krallık: Elsevier Sağlık Bilimleri. [ Google Akademik ]
        • Ünlü, M. , Ergene, E. , Ünlü, GV , Zeytinoğlu, HS , & Vural, N. (2010). Cinnamomum zeylanicum Blume'den ( Lauraceae ) elde edilen esansiyel yağın bileşimi, antimikrobiyal aktivitesi ve in vitro sitotoksisitesi . Gıda ve Kimyasal Toksikoloji , 48 , 3274–3280. [ PubMed ] [ Google Akademik ]
        • Vimalanathan, S. ve Hudson, J. (2014). Uçucu yağların ve buharların anti-influenza virüsü aktivitesi . American Journal of Essential Oil and Natural Products , 2 , 47–53. [ Google Akademik ]
        • Wang, W. , Li, N. , Luo, M. , Zu, Y. ve Efferth, T. (2012). Rosmarinus officinalis L' nin antibakteriyel aktivitesi ve antikanser aktivitesi . Uçucu yağ, ana bileşenlerine kıyasla . Moleküller , 17 , 2704–2713. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
        • DSÖ (Dünya Sağlık Örgütü) . (2014). Antimikrobiyal direnç: küresel sürveyans raporu . http://apps.who.int/iris/bitstream/1...8_eng.pdf?ua=1 . Son erişim 23 Aralık 2016.
        • Wu, S. , Patel, KB , Booth, LJ , Metcalf, JP , Lin, HK ve Wu, W. (2010). Koruyucu esansiyel yağ, influenza virüsü enfeksiyonunu hafifletir: MDCK hücrelerinde in vitro bir çalışma . BMC Tamamlayıcı ve Alternatif Tıp , 10 , 69. [ PMC ücretsiz makale ] [ PubMed ] [ Google Scholar ]
        • Zore, GB , Thakre, AD , Jadhav, S. ve Karuppayil, SM (2011). Terpenoidler, zar bütünlüğünü ve hücre döngüsünün durmasını etkileyerek Candida albicans büyümesini engeller . Fitotıp , 18 , 1181–1190. [ PubMed ] [ Google Akademik ]

        Yorum yap


        • #5
          Candida biyofilm enfeksiyonları için terapötik bir alternatif olarak gerçek tarçın ( Cinnamomum verum ) yaprağı esansiyel yağının etkinliği

          Gayan Kanchana Wijesinghe , 1, * Thais Rossini de Oliveira , 1 Flávia Camila Maia , 1 Simone Busato de Feiria , 1 Janaina Priscila Barbosa , 1 Felipe Joia , 1 Giovana Cláudia Boni , 1 ve José Francisco Höfling 1
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          1 Mikrobiyoloji ve İmmünoloji Alanı, Oral Diagnoz Bölümü, Piracicaba Dental School, State University of Campinas, SP, Brezilya
          * Sorumlu yazar: Gayan Kanchana Wijesinghe. Mikrobiyoloji ve İmmünoloji Alanı, Ağızdan Tanı Bölümü, Piracicaba Dişçilik Fakültesi, Campinas Eyalet Üniversitesi, SP, Brezilya. Tel/Faks: +94-716119219; E-posta: gkwijesinghe1989@gmail.com
          Git: Soyut

          Amaç(lar):


          Cinnamomum verum yapraklarından ekstrakte edilen uçucu yağ (EO), yüzyıllardır antimikrobiyal bir madde olarak kullanılmıştır. Ancak antifungal ve antibiyofilm etkinliği hala net bir şekilde incelenmemiştir. Bu araştırmanın amacı, C. verum yaprak EO'nun C. albicans , C. tropicalis ve C. dubliniensis'e karşı in vitro antifungal ve antibiyofilm etkinliğini ve bir in vitro model kullanarak EO'nun toksisitesini değerlendirmekti . Malzemeler ve yöntemler:


          EO buharının etkisi, bir mikroatmosfer tekniği kullanılarak değerlendirildi. Minimum İnhibitör (MIC) ve Fungisidal Konsantrasyonların (MFC) belirlenmesinde CLSI mikrodilüsyon testi kullanıldı. Öldürme süresi, standart bir protokol kullanılarak belirlendi. EO'nun yerleşik biyofilmler üzerindeki etkisi, sırasıyla XTT ve Taramalı Elektron Mikroskobu (SEM) kullanılarak ölçüldü ve görselleştirildi. Maruz kalma sonrası hücre içi değişiklikler, Geçirgen Elektron Mikroskobu (TEM) kullanılarak görselleştirildi. Toksikolojik değerlendirme İnsan Keratinosit hücre dizisi ile gerçekleştirilmiştir. EO'nun kimyasal bileşimi, Gaz Kromatografisi-Kütle Spektrometresi (GC-MS) kullanılarak değerlendirildi. Sonuçlar:


          Tüm test suşları, tarçın yağı buharına duyarlıydı. EO, test suşlarına karşı MIC değeri 1,0 mg/ml ve MFC değeri 2,0 mg/ml sergiledi. Tarçın yağının öldürme süresi 6 saatti. Yerleşik biyofilmler için Minimum Biyofilm İnhibitör Konsantrasyon (MBIC 50 ), tüm test suşları için <0,2 mg/ml idi. SEM görüntüleri, hücre duvarı hasarları, hücresel büzülmeler ve Candida'nın hif oluşumunun azaldığını gösterdi . TEM, hücre içi vakumlanma, granülasyon ve hücre duvarı hasarlarını gösterdi. Tarçın yaprağı yağı, test edilen hiçbir konsantrasyonda HaCaT hücrelerinin inhibisyonuna neden olmadı. Öjenol, tarçın yağında bol miktarda bulunan bileşikti. Çözüm:


          C. verum EO, konakçı insan üzerinde minimal toksisiteye sahip potansiyel bir alternatif anti- Candida ajanıdır.

          Anahtar Kelimeler: Antifungal ajan, Biyofilmler, Candida spp., Cinnamomum verum, Uçucu yağ
          Git: giriiş


          Şifalı bitkilerin tedavi seçeneği olarak kullanılması eski bir uygulamadır ve modern dünyada da devam etmektedir. Sri Lankalılar, Hintliler ve Japonlar da dahil olmak üzere eski Asyalılar, bu fitokimyasalları özellikle terapötik ajanlar olarak kullandılar. Tıbbi bitkilerin terapötik alternatifler olarak kullanılması, yeni tedavilere ve yüksek maliyetli ve düşük bulunabilirliğe sahip ilaçlara erişimi olmayan birçok popülasyona yardımcı olmuştur. Bu nedenle, hastalıkların/enfeksiyonların tedavisi için bitkilerin kullanımı dünya çapında ampirik olarak kullanılmaktadır. Son birkaç yılda, bilimsel gelişmelerle birlikte, tıbbi özelliklere sahip yeni bileşiklerin tanıtılması için daha fazla araştırma yapıldı ve bu da bilim insanlarının yeni, etkili, yan etkileri düşük alternatif tıbbi bileşikler bulmasına olanak sağladı ( 1-4 ) .

          C. verum yapraklarından ve kabuğundan ekstrakte edilen esansiyel yağlar, yüzyıllardır antimikrobiyal maddeler olarak kullanılmıştır. Bu bitkinin büyük ekonomik ve farmasötik-tıbbi ilgiye sahip olduğu gösterilmiş olsa da ( 5 ), tarçın yağlarının bir antimikrobiyal terapötik ajan olarak etkinliğini değerlendirmek için uygun kanıta dayalı çalışmalar henüz yapılmamıştır.

          Biyofilmler, hem hücrelerin kendisinden hem de çevreden türetilen bir hücre dışı malzeme matrisinde yaşayan bir yüzeye bağlı mikroorganizma topluluklarıdır. Bu mikroorganizmalar , bu karmaşık biyofilm ekosistemini oluşturmak için genellikle üç boyutlu bir yapı ( 6 - 8 ) halinde düzenlenir . Pek çok insan mikrobiyal enfeksiyonu (%65'ten fazla), implante edilmiş biyomalzemeler ve/veya konak yüzeylerinde biyofilm oluşumuyla ilişkilidir ( 9 , 10 ). Biyofilmler, planktonik muadili ile karşılaştırıldığında mevcut çoğu antimikrobiyale karşı daha dirençlidir. Bu nedenle, biyofilm enfeksiyonlarını tedavi etmek için alternatif biyofilm kontrol ve yok etme stratejilerinin getirilmesi önemlidir ( 11 ).

          Candida spp. periodontitis, diş çürüğü ( 12 ) ve endokardit ( 13 ), sistemik kandidiyazis, yüzeysel Candida cilt enfeksiyonları, kulak enfeksiyonları, genitoüriner sistem enfeksiyonları, santral venöz kateterler, protez kalp dahil birçok oral, oral olmayan ve cihazla ilişkili biyofilm enfeksiyonuna neden olur kapakçıklar ve idrar sondası ile ilişkili enfeksiyonlar ( 14-16 ) . Bu enfeksiyonların bir kısmı hayatı tehdit eden ciddi enfeksiyonlar iken, bir kısmı non-invaziv ve hayatı tehdit edici olmayan enfeksiyonlardır.

          C. verum yapraklarından ekstrakte edilen esansiyel yağ ile yapılan birkaç in vitro mikrobiyolojik çalışma, çoklu antimikrobiyal direnç sergileyenler de dahil olmak üzere sağlık alanındaki birçok bakteri türüyle ilgili antimikrobiyal aktiviteler gösterse de, bunun Candida türleri üzerindeki antifungal ve antibiyofilm etkileri. henüz kapsamlı değil.

          Git: Malzemeler ve yöntemler


          Mantar suşları

          Bu çalışmada üç Candida tipi suş, C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis (ATCC MYA-646) kullanıldı. Bu suşlar Mikrobiyoloji ve İmmünoloji Alanı, Piracicaba Dental School, UNICAMP, Brezilya'dan elde edildi.

          Standart Candida stokları, -80 ° C'de bir ultradondurucuda %80 gliserol içinde tutuldu. Stok organizmaları yeniden etkinleştirmek için, bunlar taze hazırlanmış Saboraud Dextrose Agar (SDA, OXOID) kültür ortamında alt kültürlendi ve 37 ° C'de 24 saat aerobik olarak inkübe edildi .

          Standart hücre süspansiyonları, 5× 10⁶ CFU/ml'ye karşılık gelen 0.08–0.10 (600 nm) absorbansa eşdeğer olan 0.5 McFarland ölçeğine göre bulanıklık ayarlanarak hazırlandı.

          Tüm deneyler, iki farklı durumda üç kopya halinde yapıldı.

          Esans

          C. verum yapraklarının buhar distilasyonu kullanılarak ekstrakte edilen uçucu yağı Romik Lanka Marketing Services, Moratuwa, Sri Lanka'dan (WCC/3569) satın alınmıştır. C. verum esansiyel yağı, Tween 80 (%0.05) çözeltisi içinde 32 mg/ml'ye seyreltildi ve MOPS (3-(N-morfolino) propan sülfonik asit) ile tamponlanmış Roswell Park Memorial Institute (RPMI) 1640, ardından sonikasyon uygulandı, 1 antimikrobiyal deneyler ve in vitro sitotoksisite için 20 saniyelik döngü . ( 17 ).

          C. verum yaprağı esansiyel yağının buhar fazındaki etkisi

          C. verum yaprak esansiyel yağının buhar fazındaki planktonik Candida hücreleri üzerindeki etkileri, Şerban ve arkadaşları tarafından açıklanan mikroatmosfer yöntemi kullanılarak kalitatif olarak belirlendi . (2011) ( 18 ).

          Tüm test suşlarının standart süspansiyonları, daha önce açıklandığı gibi hazırlandı ve SDA plakaları, steril bir pamuklu çubuk kullanılarak ayrı ayrı aşılandı. Petri kabının kapağına EO'nun çalışma solüsyonu (100 ul) ile nemlendirilmiş steril bir filtre kağıdı diski takıldı. Plakalar bir parça parafilm ile kapatıldı ve gece boyunca 37 ° C'de aerobik olarak inkübe edildi. Kontrol plakaları, filtre kağıdı diskleri olmadan hazırlandı. Agar yüzeyinde inoküle edilmiş Candida'nın büyüme inhibisyonunun varlığı veya yokluğu, 24 saatlik inkübasyondan sonra gözlendi.

          Minimum inhibitör konsantrasyonun (MIC) ve minimum fungisidal konsantrasyonun (MFC) belirlenmesi

          Klinik ve Laboratuvar Standartları Enstitüsü (CLSI) M27-A3'e (19) göre, MOPS ile RPMI 1640 içinde EO'nun iki kat dilüsyonlarından 100 ul/kuyu, 96 oyuklu polistiren mikrotitre plakalarında hazırlandı. Daha sonra dilüsyonlara 1x10⁶ hücre/ml içeren hazırlanmış standart mantar hücre süspansiyonlarından 100 ul ilave edildi ve 24 saat 37 ° C'de inkübe edildi. MİK noktası, büyümenin varlığı ve yokluğu (süspansiyonların bulanıklığı) için görsel gözlem yoluyla belirlendi.

          MFC, mantar gelişimini tamamen engellemek için gereken en düşük uçucu yağ konsantrasyonu olarak tanımlandı. MFC tayini için, önceki deneyin her bir kuyusundan 5 ul çözelti, taze hazırlanmış SDA plakalarına kaplandı ve aerobik olarak 24 saat 37 ° C'de inkübe edildi. İnkübasyon sonrası SDA yüzeyinde Candida üremesi göstermeyen en düşük konsantrasyon MFC olarak kabul edildi.

          Negatif kontrol grubu (Büyüme kontrolü): Uçucu yağ+standart hücre süspansiyonu yerine 100 µl RPMI 1640. Pozitif kontrol grubu: 120 mg/ml klorheksidin diglukonat (Sigma-Aldrich, ABD).

          Öldürme zamanı tahlili

          Yüz ul C. albicans (ATCC MYA-2876) (0.5x10⁶ CFU /ml), MIC'nin nihai EO konsantrasyonlarını elde etmek için sırasıyla 100 ul 1.0, 2.0 ve 4.0 mg/ml EO ile karıştırıldı (1 mg/ml), MİK'in yarısı (0,5 mg/ml) ve MİK'in iki katı (2 mg/ml veya MFC). 37 ° C'de farklı inkübasyon zaman aralıklarından (0, 1, 2, 3, 4, 5, 6, 12 ve 24 saat) sonra , her karışımdan 50 µl steril normal salin içinde seyreltildi, steril bir cam kullanılarak SDA üzerine kaplandı yayıcı ve 37 ° C'de 24 saat inkübe edildi. Koloniler sayıldı ve 24 saatlik inkübasyondan sonra zamana ( 20 ) karşı CFU/ml grafiği çizildi.

          Negatif kontrol: Yağ veya referans antifungal madde içermeyen test organizmaları. 120 mg/ml klorheksidin diglukonat: pozitif kontrol.

          Minimum biyofilm önleyici konsantrasyon (MBIC 50 )

          96 oyuklu steril düz dipli bir polistiren mikroplaka, her test organizmasının (100 ul/kuyu) 5x10⁶ CFU/ml standart inokulumu ile tohumlandı, ardından 37 °C'de 24 saat aerobik inkübasyon yapıldı . steril Fosfat Tamponlu Salin (PBS) ve 100 ul esansiyel yağ dilüsyonları, muamele kuyucuklarına ayrı ayrı ilave edildi. Negatif kontrol oyuklarına yağ yerine 100 ul RPMI 1640 eklendi. Plaka daha sonra 24 saat 37 ° C'de aerobik olarak inkübe edildi. Biyofilm canlılığı, XTT tahlili kullanılarak ölçüldü ( 17 , 21 ).

          Minimum biyofilm yok etme konsantrasyonu (MBEC)

          CFU tahlili, daha önce açıklandığı gibi ( 17 ) farklı C. verum yaprak yağı konsantrasyonları ile 24 saat muameleden sonra yerleşik 24 saatlik olgun biyofilmler üzerindeki yağın MBEC'sini tespit etmek için EO ile işlenmiş biyofilmler üzerinde yapıldı .

          Yerleşik Candida biyofilmlerinin maruz kalma sonrası mimarisi (taramalı elektron mikroskobu (SEM)

          Candida biyofilmlerinin maruz kalma sonrası mimari özelliklerinin belirlenmesi için , olgun biyofilmler steril 10 mm çaplı cam lamellerde oluşturuldu ve önceki bir deneyde açıklandığı gibi 24 saat boyunca RPMI 1640'ta 0.5, 1.0 ve 2.0 mg/ml EO dilüsyonları ile işlendi ve SEM ( 1 , 22 ) altında incelenmek üzere işlendi.

          Maruz kalma sonrası hücresel değişikliklerin belirlenmesi için transmisyon elektron mikroskobu (TEM)

          C. verum yaprak yağının Candida hücre yapısı üzerindeki etkisini belirlemek için , maruz kalma sonrası hücresel değişiklikler bir Transmisyon Elektron Mikroskobu (TEM) kullanılarak aşağıdaki gibi görselleştirildi.

          Kısaca, 1x10⁶ hücre yoğunluğuna sahip standart hücre süspansiyonları RPMI 1640'ta hazırlandı. Hazırlanan süspansiyonların 1 ml'si, ayrı ayrı 10xMIC (10 mg/ml) konsantrasyonundaki RPMI 1640'ta 9 ml antifungal yağ dilüsyonu ile karıştırıldı ( karışımın son EO konsantrasyonu 1.0 mg/ml idi) ve 37 ° C'de 24 saat aerobik olarak inkübe edildi. İnkübasyondan sonra, elde edilen hücre süspansiyonu santrifüjlendi ve hücre peleti, 4 ° C'de 18-24 saat süreyle Karnovsky fiksatifi ile yeniden süspanse edildi. Fiksasyondan sonra, numune, daha önce Kapoor ve arkadaşları tarafından açıklandığı gibi işlendi . (2017) ( 23 ).

          C. verum yaprağı yağının insan hücreleri üzerindeki sitotoksisitesi

          C. verum yaprak EO'nun normal insan keratinosit hücre hattı, HaCaT üzerindeki sitotoksisitesi , aşağıdakilere göre MTT (3-(4,5-dimetiltiazol-2-il)-2,5-difenil-2H-tetrazolyum bromür) canlılık tahlili ile belirlendi. Zanette ve diğerleri tarafından açıklanan protokol . (2011) ( 24 ).

          Kısaca, 96 oyuklu kültür plakaları, hücrelerle (6.5 x 10⁴ hücre /ml ve 100 ul/çukur) tohumlandı ve 24 saat süreyle inkübe edildi. Daha sonra kültür ortamı, farklı konsantrasyonlarda gerçek tarçın yaprağı EO içeren taze ortam ile değiştirildi. Muamele edilmiş plakalar ayrıca 24 saat boyunca 37 ° C'de %5 C02 ile inkübe edildi . İnkübasyondan sonra, tedavi edilen HaCat hücrelerinin yaşayabilirliği, bir MTT tahlili kullanılarak ölçüldü ( 25 ).

          Uçucu yağın kimyasal analizi

          C. verum esansiyel yağının kimyasal analizi, aşağıdaki gaz kromatografisi-kütle spektrometrisi (CG-EM) analiz koşulları kullanılarak yapıldı.

          HP-5975 seçici kütle detektörü ile birleştirilmiş HP-6890 gaz kromatografisi; HP-5MS Kılcal Kolon (30 m×0,25 mm×0,25 µm); sıcaklıklar: enjektör (220 ° C), dedektör (250 ° C), kolon (60 ° C), 3 ° C/dk, 240 ° C; 1.0 ml/dk taşıyıcı gaz akış hızı (yüksek düzeyde kurutulmuş He).

          istatistiksel analiz

          İstatistiksel analiz, Statistical Package for Social Sciences (SPSS) sürüm 16 yazılımı kullanılarak yapıldı. Üçten fazla veri setinin çoklu araçları, tek yönlü ANOVA ve iki yönlü ANOVA kullanılarak karşılaştırıldı. Anlamlılık düzeyi %5 olarak alınmıştır ( P <0.05).

          Git: Sonuçlar


          C. verum yaprak yağı buharının Candida önleyici etkisi

          Gerçek tarçın yaprağı yağı buharının üç Candida test suşuna karşı antifungal etkinliğine ilişkin sonuçlar,tablo 1. Agar yüzeyinde büyüme inhibisyonunun varlığı, ilgili mikroorganizmaların tedaviye duyarlılığını gösterir ( 18 ). Tüm Candida test suşları, C. verum yaprak EO buharının planktonik Candida (tablo 1). tablo 1


          Cinnamomum verum yaprak yağının çalışma konsantrasyonu (1,0 g/ml) varlığında planktonik test suşları tarafından sergilenen inhibisyon bölgeleri . Tüm deneyler üç kopya halinde yapıldı
          C. albicans (ATCC 5314) + Hassas
          C. tropikalis (ATCC 750) + Hassas
          C. dubliniensis (ATCC MYA-646) + Hassas
          Ayrı bir pencerede aç
          Minimum inhibitör konsantrasyon (MIC) ve minimum fungisidal konsantrasyon (MFC)

          C. verum EO ve kontrol antifungal klorheksidin diglukonata karşılık gelen MİK ve MFC değerleri,Tablo 2. C. verum, planktonik C. albicans (ATCC MYA-2876) ve C. dubliniensis (ATCC MYA-646) üzerinde klorheksidin diglukonat ile benzer etkinlik sergiledi . C tropikalis (ATCC 750), C. verum yaprak yağı ile karşılaştırıldığında klorheksidin diglukonat için daha duyarlıydı . Emülgatör (Tween 80), kullanılan konsantrasyonda mantar suşlarının büyümesini etkilemedi. MFC/MIC oranı, C. verum yaprak EO'nun test edilen her üç Candida türü üzerinde fungisidal bir etkiye sahip olduğunu göstermiştir . Tablo 2


          Candida türlerinin MİK ve MFC sonuçları . Deney, üç ayrı deneyle üç kopya halinde yapıldı. Pozitif kontrol olarak klorheksidin diglukonat kullanıldı.
          C. albicans
          (ATCC 5314)
          1.0 2.0 2.0 1.0 2.0 2.0
          C. tropikalis
          (ATCC 750)
          1.0 2.0 2.0 0,5 0,5 1.0
          C. dubliniensis
          (ATCC MYA-646)
          1.0 2.0 2.0 1.0 2.0 2.0
          Ayrı bir pencerede aç
          Öldürme zamanı tahlili

          Bu deney, gerçek tarçın yaprağı yağının (veya pozitif kontrol klorheksidin diglukonatın) canlı planktonik Candida hücrelerini in vitro kültürlerinden yok etmesi için gereken minimum süreyi belirledi . C. albicans (ATCC MYA-2876) için öldürme eğrileri,Şekil 1.
          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g001.jpg
          Şekil 1
          0,5 mg/ml, 1,0 mg/ml ve 2 mg/ml C. verum yaprak yağı ve 2,0 mg/ml klorheksidin diglukonat için Candida albicans'ın (ATCC MYA-2876) öldürme eğrileri . Hata çubukları belirtmek için çok küçük

          CV: C. verum yaprak yağı, CHL: Klorheksidin diglukonat

          Elde edilen sonuçlara göre 0,5 mg/ml ve 1,0 mg/ml C. verum yaprak yağı Candida hücrelerini 24 saatlik test süresi içinde tamamen öldürmezken , 2,0 mg/ml Candida hücrelerini 6 saat içinde tamamen öldürmektedir.

          2.0 mg/ml klorheksidin diglukonat , gerçek tarçın yaprağı yağına kıyasla Candida hücreleri üzerinde hızlı bir öldürme etkisine sahiptir, dolayısıyla öldürme süresi 1 saat olmuştur.

          Minimum biyofilm önleyici konsantrasyon (MBIC 50 )

          Negatif kontrol biyofilmlerinin (tedavisiz biyofilmler) biyofilm hücre yaşayabilirliğini %50 oranında azaltmak için gereken minimum uçucu yağ konsantrasyonları MBIC50 olarak tanımlandı .

          şekil 224 saatlik tedaviden sonra XTT canlılık testi ile belirlenen 24 saatlik olgun C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis (ATCC MYA-646) biyofilmlerinin biyofilm hücre canlılığının yüzde azalmasını gösterir C. verum yaprak yağı ile negatif kontrol (işlem görmemiş biyofilmler) ile karşılaştırıldığında.

          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g002.jpg
          şekil 2
          Candida albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) XTT metabolik aktivitesinde yüzde azalma Cinnamomum verum yaprak yağının (CV ) farklı konsantrasyonları ile muameleden sonra 24 saat yerleşik biyofilmler ) ve klorheksidin diglukonat (CHL). Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder

          XTT testinden elde edilen verilere göre, biyofilm canlılığını %50 oranında azaltmak için gerekli konsantrasyonlar aşağıdaki şekilde gösterilmiştir.Tablo 3. Tablo 3


          Candida albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) yerleşik biyofilmleri için minimum biyofilm inhibe edici konsantrasyonlar (MBIC 50 )
          MBIC 50 (mg/mL) 0.1 0.2 0.2 0,0625 0.2 0.3
          Ayrı bir pencerede aç
          CHL: Klorheksidin diglukonat

          Minimum biyofilm yok etme konsantrasyonu (MBEC)

          24 saatlik olgun biyofilmi tamamen öldürmek için gereken minimum C.verum yaprağı yağı konsantrasyonu (MBEC), CFU deneyi kullanılarak belirlendi.Figür 3CFU tahlili ile belirlenen 24 saat boyunca farklı konsantrasyonlarda C. verum yaprak yağı ve klorheksidin diglukonat ile muamele edildikten sonra 24 saat olgun biyofilmlerin canlılığını temsil eder .Tablo 4olgun C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis (ATCC MYA-646) biyofilmleri için MBEC değerlerini gösterir.

          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g003.jpg
          Figür 3
          Farklı CV konsantrasyonları : Cinnamomum verum yaprak yağı ve CHL ile 24 saat muameleden sonra yerleşik Candida albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis (ATCC MYA-646) biyofilmlerinin ortalama Log CFU değerleri : klorheksidin diglukonat Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder Tablo 4


          Candida albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA646) yerleşik biyofilmlerini tamamen öldüren Cinnamomum verum yaprağı yağı ve klorheksidin diglukonat konsantrasyonları (MBEC)
          C. albicans (ATCC MYA-2876) 2.0 1.0
          C. tropikalis (ATCC 750) 2.0 4.0
          C. dubliniensis (ATCC MYA-646) 2.0 4.0
          Ayrı bir pencerede aç
          Yerleşik biyofilmlerin taramalı elektron mikroskobu (SEM)

          1.0, 2.0 ve 4.0 mg/ml C. verum yaprağı ile muameleden sonra C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) yerleşik biyofilmlerinin ince yapısı yağ, 1 mg/ml ( C. albicans biyofilmleri için), 4,0 mg/ml ( C. tropicalis ve C. dubliniensis biyofilmleri için) klorheksidin diglukonat ve 0,008 mg/ml Flukonazol, SEM ile niteliksel olarak değerlendirilmiştir (Şekiller 4,​,5,5, Ve​ve66).
          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: IJBMS-24-787-g004.jpg
          Şekil 4
          Candida albicans'ın (ATCC MYA-2876) SEM görüntüleri, 1,0 mg/ml Tarçın verum yaprağı yağı (A ve D), 2,0 mg/ml C. verum yaprağı yağı (B ve E), 4 mg/ ile muameleden 24 saat sonra biyofilmler oluşturmuştur. ml C. verum yaprağı yağı (C ve F), 1,0 mg/ml klorheksidin diglukonat (G ve J) ve 0,008 mg/mL Flukonazol (H ve K). I ve L: Negatif kontrol. Daireler- Tedavilerle hücre duvarı deformasyonları. Kırmızı katı oklar- Hücre içi bileşenlerin sızıntıları

          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: IJBMS-24-787-g005.jpg
          Şekil 5
          Candida tropikalis'in (ATCC 750) SEM görüntüleri, 1,0 mg/ml Cinnamomum verum yaprak yağı (A ve D), 2,0 mg/ml C. verum yaprak yağı (B ve E), 4,0 mg/ml C ile 24 saat muameleden sonra biyofilmler oluşturmuştur. verum yaprağı yağı (C ve F), 4,0 mg/ml klorheksidin diglukonat (G ve J) ve 0,008 mg/ml Flukonazol (H ve K) I ve L: Negatif kontrol. Kesintisiz daireler, tedavilerle Hücre duvarı deformitelerini gösterir

          Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g006.jpg
          Şekil 6
          Candida dubliniensis'in (ATCC MYA-646) SEM görüntüleri, 1,0 mg/ml Cinnamomum verum yaprak yağı (A ve D), 2,0 mg/ml C. verum yaprak yağı (B ve E), 4,0 mg/ ile 24 saat muameleden sonra biyofilmler oluşturmuştur. ml C. verum yaprağı yağı (C ve F), 4,0 mg/ml klorheksidin diglukonat (G ve J) ve 0,008 mg/ml Flukonazol (H ve K) I ve L: Negatif kontrol. Dolu daireler-Tedavilerle hücre duvarı deformiteleri. Kesintisiz oklar-Hücre içi bileşenlerin sızıntıları

          C. verum yaprağı yağı, olgun sapsız hücrelerin, psödohiflerin ve hiflerin duvarlarına zarar vererek Candida hücrelerinin büzülmesine ve hücre içi materyallerin sızmasına neden oldu. Bu etkiler konsantrasyona bağlıydı. 4 mg/ml C. verum yaprak yağı ile maksimum hücre hasarı gözlemlendi . Hem 2 mg/ml hem de 4 mg/ml C. verum yaprak yağı, C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA ) 24 saatlik olgun biyofilmlerinin tamamen yok edildiğini gösterdi. -646) 24 saatlik tedavi ile.

          Klorheksidin diglukonat düşünüldüğünde, yerleşik Candida biyofilmleri üzerinde C. verum yaprak yağına benzer bir etki ( Candida hücrelerinin hücre duvarlarına zarar verme ve sitoplazmik sızıntılara neden olma) sergiledi . Benzer gözlemler , 0.008 mg/ml Flukonazol ile C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) 24 saat yerleşik biyofilmleri için elde edildi . 0,008 mg/ml Flukonazol ile işlenen biyofilmler, C. albicans ve C. dubliniensis biyofilmlerinde hücre duvarı deformasyonlarının ve hücre içi bileşenlerin sızıntılarının gözlemlendiğini gösteren pürüzlü hücresel yüzeyler sergiledi .

          Transmisyon elektron mikroskobu (TEM)

          Planktonik C. albicans'ın (ATCC MYA-2876) maruz kalma sonrası hücresel morfolojisi ; C. dubliniensis (ATCC MYA-646) ve C. tropicalis (ATCC 750) TEM kullanılarak belirlendi.

          C. verum yaprak yağı ve klorheksidin diglukonatın MIC'sine (1.0 mg/ml) 24 saat maruz kaldıktan sonra test suşlarının TEM görüntüleri şu şekilde elde edildi (Şekil 7): TEM, hücre duvarı hasarlarını, hücre içi granülasyonları ve vakuol oluşumunu açıkça gösterir.
          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g007.jpg
          Şekil 7
          Candida albicans'ın (A, B ve C) Transmisyon Elektron Mikroskobik (TEM) görüntüleri ; C. tropicalis (D, E ve F) ve C. dubliniensis (G, H ve I). Kırmızı katı oklar hücre içi vakuolleri, kırmızı daireler hücre duvarı hasarlarını ve siyah katı oklar sitoplazmik iri taneli inklüzyon cisimciklerini gösterir. C, F ve I negatif kontrollerdir

          C. verum yaprak yağının (HaCaT insan keratinosit hücre dizisi) in vitro sitotoksisitesi

          Şekil 8farklı konsantrasyonlarla muameleden sonra büyüme inhibisyonunun yüzdesini gösterir. Gerçek tarçın yaprağı EO veya klorheksidin diglukonatın 0-1000 mg/ml konsantrasyon aralığında HaCaT hücre canlılığında önemli bir değişiklik saptanmadı. Bu deneyde, test edilen herhangi bir EO konsantrasyonunda HaCaT hücreleri üzerinde hiçbir toksik etki kaydedilmedi.
          Resim, çizim vb. içeren harici bir dosya. Nesne adı: IJBMS-24-787-g008.jpg
          Şekil 8
          Farklı konsantrasyonlarda Cinnamomum verum yaprağı yağı ve klorheksidin diglukonat ile 24 saat muameleden sonra HaCaT hücre hattının maruz kalma sonrası MTT metabolik aktivitesi/canlılığı . Tüm hata çubukları ± 2 standart sapmayı (SD) temsil eder

          Gerçek tarçın yaprağı yağının kimyasal bileşimi

          C. verum leaf EO'nun en bol bulunan bileşiği Eugenol (%77.22) olmuştur. Benzil benzoat (%4,53), trans karyofilen (%3,39), asetil öjenol (%2,75) ve linalool (%2,11) minör bileşenler olarak belirlendi.

          Git: Tartışma


          Tarçın, yüzyıllardır birçok toplulukta ortak bir mutfak baharatı olarak kullanılmıştır. Ayrıca tarçın, farklı kültürlerde halk ilacı ve fitomedikal alternatif olarak da kullanılmıştır. Bu çalışma C. verum / gerçek tarçın yaprağı yağının enfeksiyona neden olan en yaygın üç Candida suşuna, yani C. albicans (ATCC MYA-2876), C. tropicalis'e (ATCC) karşı potansiyel bir fitomedikal terapötik alternatif olarak etkinliğini bulmak için yapılmıştır. 750) ve C. dubliniensis (ATCC MYA-646). Mevcut çalışmanın sonuçları, C . verum EO, Candida'nın test edilen tüm suşları üzerinde önemli bir antifungal aktiviteye sahipti .

          Bu çalışmada, mikroatmosferik plaka yönteminden elde edilen gözlemler, C. verum yaprak yağı buharının anti- Candida aktivitesini göstermiştir . Üç test suşunun tümü, C. verum yağ buharının uygulanmasıyla bir büyüme inhibisyonu bölgesi sergiledi (tablo 1). Normal vücut sıcaklığında C. verum yaprağı yağı buharlaştığından, bir antimikrobiyal maddenin etkilenmiş alanlarla doğrudan temas halinde olmadığı zaman etkinliğini değerlendirmek önemlidir. Dolayısıyla bu adım, C. verum EO'nun buhar fazındaki anti- Candida aktivitesi için bir tarama testi olarak düşünülebilir .

          MFC/MIC oranı, gerçek tarçın yaprağı EO'nun her üç test suşunda da fungisidal bir etkiye ( 26 ) sahip olduğunu göstermektedir. Bu veriler prensip olarak C. verum yaprak yağının planktonik Candida üzerindeki mantar önleyici etkisini gösterse de, mevcut çalışmanın MİK ve MFC değerleri yakın zamanda yayınlanan bulgulardan biraz farklıdır. ( 27 , 28 ). MIC ve MFC'deki bu farklılıklar, kullanılan EO'daki aktif bileşiklerin konsantrasyon değişimlerinden kaynaklanıyor olabilir.

          Duarte ve ark. (2005), 0,5 mg/ml'ye kadar MIC güçlü aktif olarak kabul edilir, 0,55 ila 1,5 mg/ml arasındaki konsantrasyonlar orta derecede aktif olarak kabul edilir ve 1,5 mg/ml'nin üzerinde test edilen mikroorganizmalara karşı zayıf aktif bitki materyalleri olarak kabul edilir ( 29 ) . Bu sınıflandırmaya göre, C. verum yapraklarının EO'su ile elde edilen sonuçlar, planktonik Candida üzerinde orta düzeyde antifungal aktivite göstermiştir . Öte yandan, ticari antifungal klorheksidin diglukonat, C. albicans için C. verum yaprak yağı ile benzer bir Candida önleyici etki sergiledi veC. dubliniensis MİK değerini 1 mg/ml göstererek (Tablo 2).

          Minimum etkili konsantrasyonların yanı sıra, mikrobiyal popülasyonu tamamen ortadan kaldırmak/öldürmek için gereken süre, belirli bir antimikrobiyal maddenin antimikrobiyal etkisinin temel belirleyicilerinden biridir ve belirli bir antimikrobiyal ilacın dozaj rejiminin tasarlanmasında önemli bir rol oynar ( 30 ) . Test türü üzerinde C. verum yaprak yağının öldürme süresi analizinden elde edilen sonuçlar, konsantrasyona bağlı bir öldürme süresi sergilemiştir. MFC (2.0 mg/ml) tarçın C. albicans'ı 6 saat içinde öldürürken, 2.0 mg/ml klorheksidin diglukonat C. albicans'ı 1 saat içinde öldürür (Şekil 1). C. verum EO'nun alt MFC konsantrasyonları, 24 saatlik deney süresi içinde herhangi bir mantar öldürücü etki göstermez. Öldürme süresi konsantrasyona bağlı olduğundan, EO konsantrasyonu artırılarak daha kısa öldürme süreleri elde edilebilir, ancak toksikolojik değerlendirmeler üzerinde düşünülmelidir. Öldürme süresi, antimikrobiyal profilin önemli bir bileşeni olarak kabul edilse de, Candida spp . Mevcut çalışma, mevcut verilerin bu eksikliğini ATCC tipi Candida suşları üzerinde gerçekleştirilen bir in vitro deneysel tasarımla doldurmaktadır .

          Gerçek tarçın yaprağı EO'nun Candida spp. planktonik hücreler, 24 saat kurulan Candida biyofilmlerine göre güçlü bir antifungal potansiyel tespit edildi . 0,2 mg/ml'lik bir konsantrasyonda gerçek tarçın EO, C. tropikalis ve C. dubliniensis biyofilmlerinin canlılığını en az %50 oranında azalttı, C. 0,1 mg/ml EO konsantrasyonuyla %50 canlılık azalması sergileyen albicans biyofilmi (Tablo 3). Bu bulgular, C. verum yaprak EO'nun kronik kandidiyazdan etkilenen hastalar için bir antifungal olarak potansiyel kullanımını önermektedir . Özellikle, 2 mg/ml EO'ya 24 saat maruz kalma, incelenen üç tür biyofilmin olgun biyofilmlerinin tamamen öldürülmesine neden oldu (Tablo 4). Literatürde C'nin antimikrobiyal etkisi ile ilgili az sayıda çalışma olmasına rağmen . verum yaprak EO, yayınlanmış hiçbir çalışma Candida türleri üzerindeki etkisini değerlendirmedi . biyofilmler.

          EO kimyasal stresine tabi tutulduktan sonra biyofilmlerin yapısını anlamak için SEM görüntüleri alınmıştır. Test suşlarının tüm biyofilmleri, C. verum yaprak yağının işlenmesiyle hücre duvarı hasarları, hücre duvarı deformasyonları ve hücre içi materyal sızıntıları sergiledi (Şekiller 4,​,5,5, Ve​ve6).6). Daha da önemlisi, taramalı elektron mikroskobu, tarçın yaprağı EO'nun etkilerinin doza bağlı doğasını doğruladı. Flukonazol, azol grubuna ait olduğu bilinen bir antifungal ajandır ve fungal sterol, ergosterol sentezini inhibe eder ( 20 ). Öte yandan, klorheksidin, antibakteriyel ağız çalkalama suyu olarak kullanılan bir biguaniddir. Hücrelerin morfolojisini değiştirir, mikroorganizmaların hücre duvarına zarar verir ve hücre içi bileşenleri serbest bırakır. Oral kandidiyazis için iyi bilinen bir terapötik antifungal ajan olduğu öne sürülmüştür ( 31 , 32 ). Her iki antimikrobiyal ajan da Candida hücre duvarı üzerinde etkili olduğundan , yerleşik Candida'nın alt yapısıMBEC klorheksidin diglukonat ve 0.008 mg/ml Flukonazol (önerilen maksimum in vitro tahlil konsantrasyonu, CLSI) içeren biyofilmler de görselleştirildi. Düşük konsantrasyon nedeniyle Flukonazol'ün maruz kalma sonrası yanıtının yoğunluğu minimum düzeydeydi.

          SEM gözlemlerini doğrulamak ve tek hücreli maya formlarının hücre içi/morfolojik değişikliklerini değerlendirmek için C. albicans (ATCC MYA-2876), C. tropicalis (ATCC 750) ve C. dubliniensis'in (ATCC MYA-646) TEM görüntüleri test suşları, C. verum yağının MIC'si ile işlendikten sonra alınmıştır . TEM görüntüleri, hücre duvarı hasarlarını ve hücre içi bölmenin sızıntılarını gösterdi (Şekil 7). Daha da önemlisi, TEM görüntüleri, hücre içi vakuol oluşumu, dağınık sitoplazma ve sitoplazmik granüler inklüzyon cisimciklerinin oluşumu dahil olmak üzere maruz kalma sonrası sitoplazmik değişiklikleri ortaya çıkardı. Bu değişiklikler, C. verum yaprak yağının Candida hücreleri üzerindeki kimyasal baskısını akla getirmektedir .

          Gerçek tarçın EO'nun konakçı dokular üzerindeki toksisitesi, kanser olmayan insan keratinositleri (HaCaT) hücre hattının bir in vitro hücre kültürü modeli kullanılarak değerlendirildi. Toksikoloji değerlendirmeleri etkili, toksik olmayan dozun doğru anlaşılmasını sağlar ve C. verum yaprak yağının hem farmakodinamiklerini hem de farmakokinetiğini entegre ederek doz rejimi tasarımına yardımcı olur. Ayrıca, C. verum yaprak yağının toksikoloji çalışmaları hakkında yayınlanmış bir veri eksikliği vardır ve mevcut çalışma bu eksikliği gidermektedir. Bu çalışmada test edilen maksimum konsantrasyon 1000 mg/ml (gerçek tarçın yaprağı EO yağının saf konsantrasyonu) idi ve test edilen konsantrasyonların hiçbiri HaCaT hücreleri üzerinde herhangi bir inhibitör etki göstermedi (Şekil 8). Bu bulgu, C. verum yaprak EO'nun insan hücreleri üzerinde herhangi bir toksik etki olmaksızın 1000 mg/ml'ye kadar güvenle kullanılabileceğini göstermektedir .

          Candida sapsız ve planktonik hücreler üzerindeki C. verum yaprağı yağının in vitro toksikoloji çalışması sonuçlarına ve farmakodinamiğine dayanarak , gerçek tarçın yaprağı EO, Candida enfeksiyonları için potansiyel bir terapötik alternatif olarak kabul edilebilir . Ayrıca yazarlar, C. verum yaprak EO'nun çok çeşitli patojenik mantarlar ve bakteriler üzerindeki etkisi hakkında gelecekteki araştırmaları önermektedir.

          Gerçek tarçın yaprağı EO'nun kimyasal analizinin sonuçları, öjenolün en bol kimyasal bileşeni (%77.22) olduğunu ( 33 , 34 ), diğer kimyasal bileşiklerin ise daha düşük konsantrasyonlarda göründüğünü gösteren önceki yazarların bulgularıyla uyumludur.

          Mevcut verilere göre, hem tarçın yaprağı yağı hem de klorheksidin diglukonatın benzer bir antifungal etki modu kaydedilmiştir. Lipofilik öjenol, hücre zarının fosfolipid çift tabakasına aktif olarak nüfuz ederek ve nihayetinde onu bozarak hücre duvarı bütünlüğü ve akışkanlığının yanı sıra biyofilm hücre dışı matrisine müdahale edebilir (35 ) .

          Git: Çözüm

          C'den çıkarılan EO . verum yaprakları ana kimyasal bileşeni olarak öjenol içerir. Candida türleri üzerinde antifungal etkiye sahiptir . Planktonik hücreler ve biyofilm hücre duvarı bütünlüğü üzerinde etki ederek. Ayrıca insan keratinositleri üzerinde herhangi bir toksik etkisi yoktur.

          Git: Teşekkür

          Bu makalede açıklanan sonuçlar, Gayan Kanchana Wijesinghe tarafından Campinas Eyalet Üniversitesi Piracicaba Dişçilik Okulu'na Ağız ve Diş Biyolojisi, Mikrobiyoloji ve İmmünoloji alanında Yüksek Lisans derecesi için gereksinimlerin kısmen yerine getirilmesi için sunulan tezin bir parçasıydı. . Bu çalışma Ulusal Bilimsel ve Teknolojik Gelişim Konseyi (CNPq) tarafından desteklenmiştir (hibe numaraları 132718/2018-9). Bu makale Prof. Rafael Nóbrega Stipp'in anısına ithaf edilmiştir.

          Git: Etik Beyanı


          Bu araştırmada hiçbir insan veya hayvan deneyi yapılmamıştır.

          Git: Yazar Katkıları


          GK-İşin tasavvuru veya tasarımı, veri toplama, veri analizi ve yorumlama, makale taslağının hazırlanması, makalenin kritik revizyonu, yayınlanacak versiyonun nihai onayı; FC-veri toplama, yayınlanacak versiyonun nihai onayı; TR ve SN-tasarım veya çalışmanın tasarımı, veri toplama, veri analizi ve yorumlama, yayınlanacak versiyonun nihai onayı; FJ, JP, GC, JD ve PL-veri toplama, yayınlanacak versiyonun nihai onayı; JF-çalışmanın tasarımı veya tasarımı, veri toplama, veri analizi ve yorumlama, makale taslağının hazırlanması, makalenin kritik revizyonu, yayınlanacak versiyonun nihai onayı.

          Git: Çıkar çatışmaları


          Yazarların beyan edecek çıkar çatışması yoktur.

          Git: Referanslar

          1. Wijesinghe GK, Maia FC, de Oliveira TR, de Feiria SNB, Joia F, Barbosa JP, et al. Cinnamomum verum yaprağı esansiyel yağının Candida türlerinin virülans faktörlerine etkisi ve Galleria mellonella modeli ile in-vivo toksisitesinin belirlenmesi. Mem Inst Oswaldo Cruz. 2020; 115 :e200349. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          2. Oliveira T, Teixeira A, Barbosa JP, de Feiria SNB, Boni GC, Maia F, et al. Melaleuca spp. uçucu yağ ve tıbbi uygulanabilirliği. Kısa Bir İnceleme. Braz J Nat Sci. 2020; 3 :249. [ Google Akademik ]
          3. Wijesinghe G, Jayarathna P, Gunasekara T, Fernando N, Kottegoda N, Weerasekera M. Klorheksidin glukonat, Triphala ve Munamal pothu'nun (Mimusops elengi kabuğu) Sri Lanka Enfeksiyon Hastalıkları Dergisi'nin antibakteriyel ve anti-Candida aktivitesi. 2018; 8 :25–31. [ Google Akademik ]
          4. Gupta P, Daswani P, Birdi T. Hindistan bağlamında tıbbi bitkiler için kalite parametrelerini geliştirmeye yönelik yaklaşımlar. Hintli J Pharmacol. 2014; 46 :363–371. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          5. Ranasinghe P, Pigera S, Premakumara GS, Galappaththy P, Constantine GR, Katulanda P. “Gerçek” tarçının (Cinnamomum zeylanicum) tıbbi özellikleri: sistematik bir derleme. BMC Tamamlayıcı Altern Med. 2013; 13 :275. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          6. Wijesinghe GK, Dilhari A, Gayani B, Kottegoda N, Samaranayake L, Weerasekera M. Influence of Laboratory Culture Media on In vitro Growth, Adhesion and Biofilm Formation of Pseudomonas aeruginosa and Staphylococcus aureus. Tıp Prensi Uygulaması. 2019; 28 :28–35. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          7. Acker HA, Van DP, Coenye P. Bakteriyel ve mantar biyofilmlerinde antimikrobiyal tolerans ve direncin moleküler mekanizmaları. Trendler Microbiol. 2014; 22 :326–333. [ PubMed ] [ Google Akademik ]
          8. Deveau A, Hogan DA. Candida albicans'ın Çekirdeği Algılama Yönetmeliği ve Biyofilm Oluşumunu Bağlama. Yöntemler Mol Biol. 2011; 692 :219–233. [ PubMed ] [ Google Akademik ]
          9. Percival SL, Suleman L, Vuotto C, Donelli G. Sağlıkla ilişkili enfeksiyonlar, tıbbi cihazlar ve biyofilmler: risk, tolerans ve kontrol. J Med Microbiol. 2015; 64 :323–334. [ PubMed ] [ Google Akademik ]
          10. Weerasekera MM, Wijesinghe GK, Jayarathna TA, Gunasekara CP, Fernando N, Kottegoda N, et al. Kültür ortamı, Candida albicans ve Candida tropicalis büyümesini, adezyonunu ve biyofilm gelişimini derinden etkiler. Mem Inst Oswaldo Cruz. 2016; 111 :697–702. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          11. Net JE. Candida'yı hedef alan anti-biyofilm terapötikleri için gelecekteki talimatlar. Expert Rev Anti Infect Ther. 2014; 12 :375–382. [ PubMed ] [ Google Akademik ]
          12. Lazar V, Ditu LM, Curutiu C, Gheorghe I, Holban A, Popa M, et al. Periodontitis: Yararlı Bir Referans; Arjunan. Londra, BK, : InTech Open; 2017. Dental plak biyofilmlerinin periodontal hastalık üzerindeki etkisi: Yönetim ve gelecekteki tedavi; s. 11–42. [ Google Akademik ]
          13. Nomura R, Nakano K, Nemoto H, Fujita K, Inagaki S, Takahashi T, et al. Enfektif endokarditli bir hastadan alınan kalp kapağı ve diş plağı örneklerinde Streptococcus mutans izolasyonu ve karakterizasyonu. J Med Microbiol. 2006; 55 :1135–1140. [ PubMed ] [ Google Akademik ]
          14. Maia FC, Wijesinghe GK, Oliveira TR, Barbosa JP, de Feiria SNB, Boni GC, et al. Phyllanthus niruri L (taş kıran) anti-insan hastalıklarına alternatif, antimikrobiyal ajan ve dirençli mikroorganizmalarla mücadelede uygulanabilirliği Kısa bir inceleme. Braz J Nat Sci. 2020; 3 :342–353. [ Google Akademik ]
          15. Spampinato C, Leonardi D. Candida Enfeksiyonları, Nedenleri, Hedefleri ve Direnç Mekanizmaları: Geleneksel ve Alternatif Antifungal Ajanlar. Biomed Res Int. 2013; 2013 :204237. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          16. de Oliveira Santos GC, Vasconcelos CC, Lopes AJO, de Sousa Cartágenes MdS, Filho AKDB, do Nascimento FRF, et al. Candida Enfeksiyonları ve Terapötik Stratejiler: Geleneksel ve Alternatif Ajanlar için Etki Mekanizmaları. Ön Mikrobiyol. 2018; 9 :1351. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          17. Wijesinghe GK. Gerçek Tarçın (Cinnamomum verum) Yaprağı Yağının In VitroCandida Biyofilmlerine Etkisi ve Sitotoksik Etkisi. Yüksek Lisans Tezi. Campinas Devlet Üniversitesi, Brezilya. 2019. Şu adresten erişilebilir: http://repositorio.unicamp.br/jspui/...Kanchana_M.pdf .
          18. Serban ES, Ionescu M, Matinca D, Maier CS, Bojiţă MT. Sekiz uçucu esansiyel yağın antibakteriyel ve antifungal aktivitesinin taranması. Farmacia. 2011; 59 :440–46. [ Google Akademik ]
          19. CLSI. Mayaların Antifungal Duyarlılık Testi için Performans Standartları. 1. baskı CLSI Eki M60. Wayne. PA: Klinik ve Laboratuvar Standartları Enstitüsü; 2017. [ Google Akademik ]
          20. Khodavandi A, Alizadeh F, Vanda NA, Karimi G, Chong PP. Candidaalbicans'a karşı terbinafin ile kombinasyon halinde flukonazolün antifungal aktivitesinin olası mekanizmaları. Eczacı Biol. 2014; 52 :1505–1509. [ PubMed ] [ Google Akademik ]
          21. Souza CMC, Junior SAP, Moraes TDS, Damasceno JL, Mendes SA, Dias HJ, et al. Bitki kaynaklı esansiyel yağların Candida tropicalis planktonik ve biyofilm hücreleri üzerindeki antifungal aktivitesi. Med Mycol. 2016; 54 :515–523. [ PubMed ] [ Google Akademik ]
          22. Gayani B, Dilhari A, Wijesinghe GK, Kumarage S, Abayaweera G, Samarakoon SR, et al. Doğal curcuminoids-intercalated katmanlı çift hidroksit nanohibridin Staphylococcus aureus, Pseudomonas aeruginosa ve Enterococcus faecalis'e karşı etkisi: Bakterisidal, antibiyofilm ve mekanik bir çalışma. Mikrobiyoloji açık. 2019; 8 :e00723. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          23. Kapoor G, Saigal S, Elongavan A. Antibiyotiklerin Etki ve Direnç Mekanizmaları: Klinisyenler İçin Bir Kılavuz. J Anesthesiol Clin Pharmacol. 2017; 33 :300–305. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          24. Zanette C, Pelin M, Crosera M, Adami G, Bovenzi M, Larese FF, et al. Gümüş nanoparçacıklar, insan keratinosit HaCaT hücre hattı üzerinde uzun süreli bir antiproliferatif etki gösterir. Vitro Toksikoloji. 2011; 25 :1053–1060. [ PubMed ] [ Google Akademik ]
          25. Tantengco OAG, Jacinto SD. Premna odorata (Blanco), Artocarpus camansi (Blanco) ve Gliricidia sepium'dan (Jacq) elde edilen ham ekstraktların ve fraksiyonların seçilmiş insan kanser hücre hatlarına karşı sitotoksik aktivitesi. Asya Pac J Trop Biomed. 2015; 5 :1037–1041. [ Google Akademik ]
          26. Siddiqui ZN, Farooq F, Musthafa TNM, Ahmad A, Khan AU. Yeni halopirazol türevlerinin sentezi, karakterizasyonu ve antimikrobiyal değerlendirmesi. Suudi Kimya Derneği Dergisi. 2013; 17 :237–43. [ Google Akademik ]
          27. Castro RD, Lima EO. Cinnamomum zeylanicum blume esansiyel yağının Anti-Candida aktivitesi ve kimyasal bileşimi. Braz Arch Biol Technol. 2013; 56 :749–55. [ Google Akademik ]
          28. Rangel MDL, Aquino SGD, Lima JMD Castellano LR, de Castro RD. Cinnamomum zeylanicum blume esansiyel yağının oral enfeksiyonlara karışan Candida türleri üzerine in vitro etkisi. Kanıta dayalı Tamamlayıcı Alternat Med. 2018; 2018 :4045013. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          29. Duarte MC, Figueira GM, Sartoratto Um, Rehder VLG, Delarmelina C. Brezilya tıbbi bitkilerinin Anti-Candida aktivitesi. J Etnofarmakol. 2005; 97 :305–311. [ PubMed ] [ Google Akademik ]
          30. Bax HI, Bakker-Woudenberg IAJM, de Vogel CP, van der Meijden A, Verbon A, de Steenwinkel JEM. Anti-tüberküloz ilaçların aktivitesini değerlendirmek için preklinik modelleme çerçevesinin bir parçası olarak zaman öldürme kinetiği testinin rolü. Tüberküloz. 2017; 105 :80–85. [ PubMed ] [ Google Akademik ]
          31. Da Silva PMB, Acosta EJTR, de Rezende Pinto L, Graeff M, Spolidorio DMP, Almeida RS, et al. Klorheksidin glukonat ve sodyum hipoklorit işlemlerinden sonra ısıyla polimerize edilmiş akrilik reçine üzerindeki Candida albicans biyofilmlerinin mikroskobik analizi. Mikozlar. 2011; 54 :e712–e717. [ PubMed ] [ Google Akademik ]
          32. Scheibler E, da Silva RM, Leite CE, Campos MM, Figueiredo MA, Salum FG, et al. Kombine nistatin ve klorheksidinin Candida albicans'ın süspansiyonlarına ve biyofilmlerine karşı stabilitesi ve etkinliği. Oral Biyoloji Arşivleri. 2018; 89 :70–76. [ PubMed ] [ Google Akademik ]
          33. Jantan IB, Karim Moharam BA, Santhanam J. Jamal JA. Sekiz Cinnamomum Türünün Uçucu Yağlarının Kimyasal Bileşimi ve Antifungal Aktivitesi Arasındaki Korelasyon. Eczacı Biol. 2008; 46 :406–412. [ Google Akademik ]
          34. Choi O, Cho SK, Kim J, Park CG, Kim J. Karyojenik bakteriler, Streptococcus mutans ve Streptococcus sobrinus'a karşı Cinnamomum verum esansiyel yağlarının in vitro antibakteriyel aktivitesi ve ana biyoaktif bileşenleri. Asya Pasifik Tropikal Biyotıp Dergisi. 2016; 6 :308–314. [ Google Akademik ]
          35. Pavesi C, Banks LA, Hudaib T. Öjenolün antifungal ve antibakteriyel aktiviteleri ve Syzygium aromaticum L.J Pharma Sci Res. 2018; 10 :337–339. [ Google Akademik ]

          Yorum yap


          • #6
            Cinnamomum zeylanicum kabuğu esansiyel yağı, Candida albicans'ta hücre duvarı yeniden şekillenmesini ve iğ kusurlarını indükler

            Zinnat Shahina , 1 Amira M. El-Ganiny , 2 Jessica Minion , 3 Malcolm Whiteway , 4 Taranum Sultana , # 1 ve Tanya ES Dahms # 1,
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            1 Kimya ve Biyokimya Bölümü, Regina Üniversitesi, 3737 Wascana Parkway, Regina, SK Kanada
            2 Mikrobiyoloji ve İmmünoloji Anabilim Dalı, Eczacılık Fakültesi, Zagazig Üniversitesi, Zagazig, Mısır
            3 Regina Qu'Appelle Sağlık Bölgesi, Regina, SK Kanada
            4 Yapısal ve İşlevsel Genomik Merkezi, Concordia Üniversitesi, Montreal, QC Kanada
            Taranum Sultana, E-posta: ac.anigeru@anatlus.munarat .
            Katılımcı Bilgileri .
            Sorumlu yazar.
            # Eşit katkıda bulundu. İlişkili Veriler

            Tamamlayıcı Malzemeler
            Git: Soyut

            Arka plan


            Tarçın ( Cinnamomum zeylanicum) kabuğu özü, Candida albicans'a karşı güçlü bir inhibitör aktivite sergiler , ancak bu uçucu yağın antifungal mekanizmaları büyük ölçüde keşfedilmemiştir.

            Sonuçlar

            Tarçın kabuğu yağının C. albicans üzerindeki etkisini analiz ettik.RSY150 ve kandidemi ve kandidiyazlı hastalardan izole edilen klinik suşlar. RSY150'nin yaşayabilirliği, alt inhibitör düzeylerde (62,5 μg/mL) kapsamlı hücre yüzeyi yeniden modellemesi ile tarçın kabuğu yağına maruz bırakıldığında doza bağlı bir şekilde önemli ölçüde tehlikeye girdi. Atomik kuvvet mikroskopisi, hem RSY150 hem de tarçın kabuğu yağına maruz kalan klinik izolatlar için hücre yüzeyi pul pul dökülmesini, değişen alt yapıyı ve azalmış hücre duvarı bütünlüğünü ortaya çıkardı. Tarçın kabuğu yağının neden olduğu hücre duvarı hasarı, stres faktörlerine maruz kalma ve hücre duvarı organizasyonu, biyogenez ve morfogenezde yer alan hücre duvarı mutantlarının duyarlılığı ile doğrulandı. Uçucu yağ, mitotik iğ kusurlarına yol açan beta tübülin dağılımını bozarak hücre döngüsü durmasını tetikledi, sonuçta hücre zarını tehlikeye atar ve hücresel bileşenlerin sızmasına izin verir. Tarçın kabuğu yağının çoklu hedefleri, sinnamaldehit (%74) dahil olmak üzere bileşenlerine ve linalool (%3,9), sinamil asetat (%3,8), a-karyofillen (%5,3) gibi minör bileşenlere (< %6) bağlanabilir. ) ve limonen (%2). Mitotik iğ düzeneğinin tamamen inhibisyonu gözlendiMIC'de (112 μg/mL) sinnamaldehit ile tedavi edilen C. albicans .

            Sonuçlar

            Sinnamaldehit hem hücre duvarını hem de tübülin polimerizasyonunu bozduğundan, ya özgüllüğünü ve etkinliğini geliştirmek için kimyasal modifikasyonla ya da diğer mantar önleyici ilaçlarla kombinasyon halinde etkili bir mantar önleyici olarak hizmet edebilir.

            Elektronik yardımcı malzeme

            Bu makalenin çevrimiçi sürümü (10.1186/s40694-018-0046-5), yetkili kullanıcılara sunulan ek materyal içermektedir.

            Anahtar Kelimeler: Cinnamomum zeylanicum , Candida albicans , Esansiyel yağ, Hücre duvarı yeniden şekillenmesi, İğ kusurları
            Git: Arka plan


            Kommensal bir mantar olan Candida albicans , HIV/AIDS'li bağışıklığı baskılanmış bireylerde ve kanser kemoterapisi alan hastalarda olduğu gibi düşük konakçı bağışıklığı altında dirençli bir patojene dönüşür [ 1-3 ] . Bu tür enfeksiyonları tedavi etmek için sınırlı sayıda antifungal mevcuttur ve azoller, ekinokandinler, polienler ve alilaminler dahil olmak üzere bu antifungal sınıfların kullanımına yan etkiler eşlik edebilir. Zayıf biyoyararlanım daha yüksek dozlar gerektirir, bu da sonuçta direnç ve etkisizliğe neden olabilir [ 4 ]. Sistemik mantar enfeksiyonunu takiben devam eden yüksek morbidite ve antifungal ajanlara karşı ortaya çıkan direnç, alternatiflere olan ihtiyacın altını çizmektedir [ 5]. Bu bağlamda, uçucu yağlar (EO'lar), güçlü antimikrobiyal ve antibiyofilm aktiviteleri nedeniyle popülerlik kazanıyor [ 6 , 7 ]. Diğer esansiyel yağlarla veya mevcut antifungal ajanlarla EO kombinasyonları, çoklu ilaca direnç olasılığını büyük ölçüde azaltabilir [ 6 – 11 ]. Bununla birlikte, antifungal ajanlar olarak klinik kullanım için değerlendirilmeden önce bağımsız farmakolojik özelliklerini ve potansiyel yan etkilerini tam olarak değerlendirmek için kapsamlı çalışmalara ihtiyaç vardır.

            Tarçın yağı, Cinnamomum zeylanicum'un dal, kabuk ve yapraklarından elde edilen aromatik bir sıvıdır [ 12 ]. Tarçın kabuğu (CNB) ve yapraklarının (CNL) özleri, antik çağlardan beri birçok kültürde terapötik olarak yaygın bir şekilde kullanılmaktadır. CNB yağının C. albicans ve albicans olmayan spp.'nin planktonik ve biyofilm kültürüne karşı anti-kandida aktivitesi . belgelenmiştir [ 7 , 13 – 15 ]. CNB yağının ana bileşenleri arasında trans-sinnamaldehit ve her biri mantar önleyici aktiviteye sahip öjenil asetat, linalool ve benzil benzoat gibi küçük bileşenler bulunur [ 16 – 20]. CNB yağının hücre zarı geçirgenliğini ve akışkanlığını değiştirdiği ve biyofilm oluşumunu [ 7 , 13 , 15 , 21 ] engellediği gösterilmiştir , ancak toksisite mekanizmaları bilinmemektedir. Öte yandan, her bir bileşen, hücre zarı ve sitozol dahil olmak üzere çeşitli hücresel bölgelerde etkilerini gösteren kapsamlı bir şekilde incelenmiştir. Örneğin, CNB yağının ana bileşeni olan sinnamaldehit, zarı hedefler ve Saccharomyces cerevisiae'de gözlemlendiği gibi β-1-3-glukan sentaz inhibisyonuna atfedilen C. albicans'ta [ 16 ] hücre duvar kalınlığının artmasına neden olur [ 22]. Sinnamaldehit maruziyeti üzerine tomurcuk izi oluşumundaki artış ayrıca hücre bölünmesi üzerinde bir etki olduğunu ve canlılığın azalmasıyla sonuçlandığını gösterir [ 16 , 23 ]. Benzil benzoat ve linalool , minimum inhibitör konsantrasyondan (MIC) [ 7 , 16 , 17 , 23 ] daha yüksek konsantrasyonlarda, sırasıyla [ 20 ] G2-M ve G1 fazlarında membran akışkanlığını etkiler ve hücre döngüsü durmasını indükler . Hücre duvarı ve zarının CNB yağının birincil hedefleri olduğunu ve bunun da Candida'nın hayatta kalması için hayati önem taşıyan hücre içi süreçleri bozduğunu varsaydık.

            Burada, atomik kuvvet mikroskobu (AFM), lazer taramalı konfokal mikroskopi (LSCM) ve geleneksel biyokimyasal tahliller kullanarak CNB yağının antikandidal etkilerinin ayrıntılı bir karakterizasyonunu sunuyoruz. AFM kantitatif görüntüleme (QI™), antifungallerin [ 24 – 28 ], besin stresinin [ 29 ], oksidatif stresin [ 30 ] etkisini değerlendirmek ve maya genetik mutantlarını [ 31 ] karakterize etmek için güçlü bir araçtır; oysa floresan belirteçlerin LSCM görüntülemesi, Hücre içi süreçlerdeki belirgin kusurlar. AFM, RSY150'nin morfolojik, ultrastrüktürel ve biyofiziksel özelliklerini ve CNB yağına maruz kalan bir klinik izolatı ölçmek için kullanıldı. C. albicans'ın RSY150 suşuRFP etiketli histon proteini B (Htb-RFP) ve GFP etiketli β-tubulin (Tub2-GFP) ile CNB yağına maruz kalmaya yanıt olarak hücre döngüsü kusurlarını izlemek için kullanıldı. Son olarak, görüntüleme ile tanımlanan fizyolojik değişiklikleri doğrulamak için biyokimyasal tahliller kullanıldı. İlk kez CNB yağının, ana bileşeni olan sinnamaldehite atfettiğimiz β-tubulin depolimerizasyonuna ve hücre döngüsü durmasına neden olduğunu rapor ediyoruz.

            Git: Yöntemler

            Kimyasallar ve medya
            Tarçın kabuğu esansiyel yağı (Chemical Abstract Service (CAS), kayıt numarası 8015-91-6), Cinnamon zeylanicum'un (tarçın) kurutulmuş iç kabuğundan (Now food, ABD) buharla damıtılmış bir ekstrakttı . Bacto™ agar, maya ekstraktı ve pepton Difco'dan (BD Biosciences, NJ, ABD) temin edildi ve diğer tüm kimyasallar Sigma Chemical Co.'dan (St. Louis, MO, ABD) satın alındı.

            CNB uçucu yağ analizi

            CNB yağı, daha önce bildirilen yöntemlere göre bir Agilent 7890A GC ile gaz kromatografisi-alev iyonizasyon tespiti (GC-FID) ve gaz kromatografisi-kütle spektrometrisi (GC-MS) kullanılarak analiz edildi [32 , 33 ] . Kısaca, 1 ul seyreltilmiş CNB yağı (etanol içinde 1:10) bir HP-5 kolonuna (30 mm x 0,32 mm x 0,25 µm) enjekte edildi ve bir taşıyıcı helyum gazı (1,1 mL/dk sabit akış) kullanılarak ayrıldı. aşağıdaki sıcaklık gradyanı ile: 5 dakika için 60 °C, 3 °C/dk'da 210 °C'ye ve 10 °C/dk'da 260 °C'ye yükseltildi. GC-FID enjektör ve detektör sıcaklıkları 250 °C idi ve enjeksiyonun bölünme oranı 20:1 idi. Benzer koşullar kullanan GC-MS için, 200:1'lik bir bölünme oranıyla 0,2 ul enjekte edildi ve bir HP-5MS kolonunda (30 mm x 0,25 mm x 0,25 um) ayrıldı.

            Tutma indeksleri (RI), hem GC-FID hem de GC-MS yöntemleri için bir C8-20 standardı (her biri ~ 40 mg/L, heksan cinsinden) kullanılarak belirlendi. RI değerlerinin, yağın her bileşeni için yöntemler arasında ortalaması alındı ​​ve NIST14 veri tabanı ve bildirilen literatür [ 32 , 34 ] kullanılarak belirlendi.

            Suşlar ve kültür koşulları
            Bu çalışmada kullanılan Candida albicans suşları ve klinik izolatlar Tablo'da açıklanmıştır. 1. RSY150 ve RSY35 suşları, Dr. Richard J. Bennett'in nazik bir hediyesiydi. RSY150, Tub2-GFP ve Htb-RFP'yi eksprese eder ve RSY35, sadece Tub2-GFP'yi eksprese eden bir Kar3 delesyon mutantıdır [ 35 ]. Kar3, çiftleşme sırasında maya nükleer füzyonu için gerekli olan farklı bir mikrotübül bağlanma alanına birleştirilmiş kinesin benzeri bir motor alana sahip iki işlevli bir proteindir [ 36]. Suşlar -80 °C'de %50 gliserol stokları halinde saklandı ve %1 Bacto-maya özütü, %2 Bacto-pepton, %2 glukoz ve %2 Bacto-agar içeren maya-ekstraktlı pepton dekstroz agarda (YPDA) taze olarak canlandırıldı. her deneyden önce. Tüm suşlar, 30 °C'de sürekli çalkalama (200 rpm) ile YPD sıvı besiyerinde ve mutant suşlar 80 mg/L üridin (YPDU) ile takviye edilerek büyütüldü. Mayadan hif geçişine ve sızıntı deneylerine yönelik olarak, hücreler CNB yağına maruz bırakılmadan önce orta log fazına kadar büyütüldü. Hifal indüksiyon deneyleri için hücreler, %10 fetal sığır serumu ve %2 glikoz içeren YPD sıvı besiyerinde büyütüldü.

            tablo 1


            Bu çalışmada kullanılan Candida albicans suşları
            RSY150 TUB2 - GFP - SAT1/TUB2 _ HTB1 - RFP - ARG4 _ /HTB1 _ arg4 _/_ [ 35 ]
            RSY35 leu2::hisG/leu2::hisG his1::hisG/his1::hisG arg4::hisG/arg4::hisG kar3::LEU2/kar3::HIS1 TUB2/TUB2 - GFP::SAT1 [ 35 ]
            CASS1 his3::hisG/his3::hisGleu2::tetRGAL4AD - URA3/LEU2 [ 37 ]
            ATCC 64548 referans suşu Cedarlane Laboratuvarları, Ontario, Kanada
            ATCC 10231 Klinik izolatlar için referans suş RQHR, Regina,
            SK, Kanada
            C. albicans (1-4) Klinik izolatlar; 2 kan, 2 genital RQHR, Regina, SK, Kanada
            C. albicans nakavt mutantlar
            VPS28 his3::hisG/his3::hisGleu2::tetRGAL4AD - URA3/LEU2 - VPS28 [ 37 ]
            CRH11 his3::hisG/his3::hisGleu2::tetRGAL4AD - URA3/LEU2 - Crh11 [ 37 ]
            SSU81 his3::hisG/his3::hisGleu2::tetRGAL4AD - URA3/LEU2 - SSU81 [ 37 ]
            DFG5 his3::hisG/his3::hisGleu2::tetRGAL4AD - URA3/LEU2 - DGF5 [ 37 ]
            Ayrı bir pencerede aç Minimum inhibitör konsantrasyon (MIC)


            CNB yağının MIC'si, Tabloda listelenen tüm suşlar için belirlendi. 1Klinik ve Laboratuvar Standartları Enstitüsü [CLSI 2014] [ 38 ] ve daha önce bildirilen yöntemin [ 15 ] yönergelerini hafif değişikliklerle takip ederek. Kısaca, 100 ul CNB yağı (stok konsantrasyonu 1000 ug/mL), düz tabanlı polistiren 96 oyuklu mikrotitre plakalarının (Sarstedt, Nümbrecht, Almanya) oyuklarında üç kopya halinde seri olarak seyreltildi. Uygun pozitif (amfoterisin B) ve negatif ( yalnızca ortamda Candida ) kontrolleri ve bir kör (ortamda CNB yağı) ile birlikte YPD'de C. albicans'ın (2,2 x 10⁵ hücre /mL) bir süspansiyonu (OD 600 = 0,001) eklendi. ) dahil. Mikrotitre plakaları, yağın buharlaşmasını ve OD'yi önlemek için 30 °C'de inkübasyondan önce parafilm ile kapatıldı.600 24 saat sonra kaydedildi (Biotek Epoch; Kuzey Vermont, ABD). Bitiş noktası, negatif kontrol oyuklarındaki büyümeye kıyasla büyümenin toplam inhibisyonuna (MIC %100) neden olan en düşük bileşik konsantrasyonu olarak tanımlandı. Tüm deneyler üç kopya halinde gerçekleştirildi. Sinnamaldehit (stok konsantrasyonu 450 μg/mL) ve linalool (stok konsantrasyonu 9.85 mg/mL) için MIC'ler de RSY150 ve RSY35 [ 16 , 39 , 40 ] için test edildi.

            CNB yağına maruz kalma ile C. albicans'ın büyümesi ve yaşayabilirliği büyüme eğrileri
            CNB yağının C. albicans'ın büyüme kinetiği üzerindeki etkisini araştırmak için , 2.2 x 10⁵ hücre/mL (OD 600 of 0.001) içerecek şekilde seyreltilmiş bir gecelik C. albicans RSY150 kültürü, CNB yağı (62.5, 31.25 ve 15.1) ile işlendi. 1/2 MİK, 1/4 MİK ve 1/8 MİK'e karşılık gelen µg/mL) bir mikrotitre plakasının ayrı kuyucuklarında üçlü olarak ve 30 °C'de inkübe edildi [ 41 , 42 ]. OD 600, bir BioTek Synergy HTX çok modlu mikroplaka okuyucu (Kuzey Vermont, ABD) kullanılarak 24 saat boyunca 30 dakikalık aralıklarla ölçülmüştür. Üç bağımsız deney için arka plan emilimini belirlemek üzere CNB yağı içeren ortam kullanıldı.

            Hücre canlılığı
            CNB yağına maruz kaldıktan sonra hücre canlılığı, daha önce bildirildiği gibi metilen mavisi boya dışlama testi kullanılarak belirlendi [ 43 ]. Kısaca, orta logaritmik faz C. albicans RSY150 kültürleri (2,2 x 10⁵ hücre/mL) çeşitli konsantrasyonlarla (1/2 MIC, 1/4 MIC ve 1/8 MIC'ye karşılık gelen 62,5, 31,25 ve 15,1 µg/mL) işlendi. 24 saat boyunca 30 °C'de CNB yağı. Formaldehit ile sabitlenen hücreler, boyama için pozitif kontroller olarak kullanıldı. Hücreler yıkandı ve fosfat tamponlu salin (PBS;0.01 M pH 7.4) içinde ~ 107'ye yeniden süspanse edildi CFU/mL, ardından 100 uL işlenmiş ve kontrol hücre süspansiyonları 100 uL metilen mavisi (%2 sodyum sitrat içinde 0,1 mg/mL stok solüsyonu) ile karıştırılmış ve 5 dakika oda sıcaklığında inkübe edilmiştir. Hücreler, 40x büyütmede bir Eclipse 80i mikroskobu (Nikon) kullanılarak incelendi. Ardışık görsel alanlarda minimum 100 hücre incelendi ve lekeli hücrelerin yüzdesi Nikon SPOT yazılımı [ 44 ] kullanılarak hesaplandı.

            Koloni oluşturan birimleri (CFU) belirlemek için, kontrollerle birlikte gece boyunca CNB yağıyla işlenmiş C. albicans RSY150 (1/2 MIC, 1/4 MIC ve 1/8 MIC) kültürleri seri olarak seyreltildi (10 3 , 10 4 , 10 5 hücre/mL) ve YPD agar [ 45 ] üzerinde kopyalar halinde kaplandı. Canlı koloniler sayıldı ve üç kopya halinde hazırlanan her spesifik CNB yağı konsantrasyonunda kaydedildi.

            Morfolojik analiz
            0.01 μg/mL'lik bir konsantrasyonda Calcofluor white (CFW), kan ve genital klinik izolatlarla birlikte RSY150 ile işlenmiş CNB yağında brüt morfoloji ve kitin dağılımını vurgulamak için kitine özgü bir boya [ 35 ] olarak kullanıldı. Orta logaritmik (1 x 10⁷ hücre/mL) ve durağan (2.2 x 10⁵ hücre /mL) olmak üzere her biri iki büyüme fazındaki hücre süspansiyonları , MIC ve 1/2 MIC CNB yağı ile işlendi ve bir Axio Observer Z1 üzerinde görüntülendi. 63x büyütmede (λ ex = 365 nm; λ em = 435 nm) ters epifloresan mikroskobu (Oberkochen, Almanya).

            hifal indüksiyon
            C. albicans RSY150'de hif indüksiyonu literatüre göre yapılmıştır [ 46 ]. Kısaca, %10 fetal sığır serumu (FBS) ile önceden ısıtılmış YPD'de orta logaritmik faz hücrelerinden bir maya süspansiyonu (1 x 10⁷ CFU/mL) hazırlandı ve uygun miktarlarda CNB yağı ile 12 oyuklu bir plakaya bırakıldı. MIC ve 1/2 MIC elde edin. Kontrol kültürlerinde CNB yağı yoktu. Hücreler, 37 °C'de 4 saatlik inkübasyondan sonra hifleri ve yalancı hifleri vurgulamak için CFW (0,01 μg/mL) ile boyandı ve görüntüler bir AxioObserver Z1 ters çevrilmiş epifloresan mikroskobunda (Oberkochen, Almanya) yakalandı. Germ tüpleri, hücre projeksiyonu blastosporun boyutuna eşit olduğunda tanımlandı. Üç bağımsız deneyden elde edilen sonuçlar, ortalama ± standart sapma olarak rapor edildi.

            Ultrayapısal ve mekanik analiz
            CNB yağı ile işlenmiş C. albicans RSY150'nin hücre yüzeyi biyofiziksel özellikleri ve kandan bir klinik izolat, daha önce tarif edildiği gibi bir Nanowizard III AFM (JPK Instruments, Berlin, Almanya) kullanılarak Kantitatif Görüntüleme (QI™) ile analiz edildi [47 , 48 ] . Kısaca, 24 saat boyunca sadece YPD (kontrol) veya YPD ile 1/2 MIC CNB yağı ile tedavi edilen her iki suştan hücre süspansiyonları (2.2 x 10⁵ hücre /mL) poli- l üzerine biriktirildi.-1 saat boyunca lizin kaplı lamel, formalinle sabitlendi ve AFM görüntülemeden önce havayla kurutuldu. Mantar duvarı parçalayıcı enzim olan glukanaz ile muamele edilen hücreler, pozitif kontrol görevi gördü. Numuneler, 0.03 ila 0.062 N/m arasında kalibre edilmiş yay sabitlerine sahip silikon nitrür çıkıntılarla (HYDRA6R-200NG; Nanosensors, Neuchatel, İsviçre) görüntülendi.

            128 x 128 raster taramanın her pikselinde elde edilen QI kuvvet eğrileri (JPK yazılımı), QI™ için 7 μm Z uzunluğu ve 100 μm/s tarama taraması kullanılarak toplandı. Yapışma ve Young modülü hesaplamaları, beş biyolojik kopyanın her birinden toplanan yaklaşık 16.536 kuvvet eğrisinden yapılmıştır. Hücrenin merkezindeki 200 x 200 nm'lik bir kare içindeki tüm kuvvet eğrileri toplu işlendi ve Excel kullanılarak JPK yazılımından histogram verileri dışa aktarıldı. Yapışma, geri çekme eğrisinin en düşük noktası ile taban çizgisi arasındaki mesafe ve hücre zarfı esnekliğinin bir tahmini olan Hertz modeli (JPK yazılımı) kullanılarak belirlenen Young modülleri kullanılarak belirlendi. QI™ yükseklik görüntüleri [ 48 ] kullanılarak hücrenin orta noktasında yüzey pürüzlülüğü ölçüldü ve hücre hacmi "Elipsoid" kullanılarak hesaplandı (http://planetcalc.com/ ) [ 49 ] üç farklı numuneden en az 20 farklı hücre için.

            membran bütünlüğü
            CNB yağına maruz kalmanın ardından hücre zarının bütünlüğünü değerlendirmek için, hücresel içerik sızıntı deneyi [ 43 ] küçük bir değişiklikle gerçekleştirildi. Kısaca, C. albicans RSY150'nin bir orta logaritmik faz kültürü, üç kez yıkandı ve ~10 7'ye yeniden süspanse edildi. PBS'de CFU/mL. Hücre süspansiyonları, PBS içinde MIC, 1/2, 1/4 ve 1/8 MIC'de CNB yağı içeren 24 oyuklu bir plakaya aktarıldı ve 30 °C'de 6 saat çalkalanarak (200 rpm) inkübe edildi. PBS'deki CNB yağı, negatif kontroller olarak PBS'de boş, işlenmemiş hücreler olarak görev yaptı ve MIC'de amfoterisin B, pozitif kontrol olarak görev yaptı. İnkübasyonun ardından, hücre sızıntısı, 260 nm'de (Varian Cary 100 BIO, UV-VIS spektrofotometre; Midland, ON, Kanada) absorbansa dayalı olarak PBS ile 1:10 oranında seyreltilmiş süpernatandan CNB yağı içermeyen bir köre karşı analiz edildi. Nükleotidler, urasil içeren bileşiklerin en yüksek absorbansa sahip olduğu, 260 nm'de absorbe eden bir sızıntı bileşenleri sınıfını temsil eder. Üç bağımsız deneyden elde edilen her muamele için ortalama oranlar hesaplandı ve karşılık gelen işlenmemiş numunelerinkiyle karşılaştırıldı.

            Hücre duvarı stresi
            C albicans'ın CNB yağına maruz kaldıktan sonra hücre duvarını bozan ajanlara (Kongo kırmızısı (CR) ve CFW) duyarlılığı , daha önce bildirilen bir yöntem [ 6 ] izlenerek küçük değişikliklerle test edildi . Kısaca, C. albicans RSY150'nin (2.2 x 10⁵ hücre/mL) YNB tam ortamında, maruz bırakılmayan veya 1/2 MIC ve 1/4 MIC'de CNB yağına maruz bırakılan gece sabit faz kültürleri , çalkalanarak 24 saat inkübe edildi ( 200 rpm) 30 °C'de bir mikrotitre plakasında. Hücreler, yağ kalıntılarını ve yağın farklı oyuklara herhangi bir şekilde bulaşma etkisini ortadan kaldırmak için PBS ile yıkandı. Her birinden bir alikot (5 uL), 105 , 104 , 103 nihai yoğunluklara seyreltildi hücre/mL ve aşağıdaki hücre duvarı bozucu ajanlardan biri ile desteklenmiş YNB plakalarında lekelendi: CFW (15 μg/mL) veya CR (15 μg/mL). Plakalar, 30°C'de inkübe edildi ve 3 gün boyunca Candida büyümesi açısından izlendi. Her deney üç kopya halinde gerçekleştirildi ve koloniler istatistiksel analiz ve grafik gösterim için sayıldı.

            konfokal mikroskopi
            CNB yağı tedavisinin hücre döngüsü üzerindeki etkileri, lazer taramalı konfokal mikroskopi (LSCM) [ 35 ] ile belirlendi . Orta logaritmik fazda (10 7 hücre/mL) Tub2-GFP ve Htb-RFP [ 35 ] eksprese eden RSY150 hücreleri, 4 saat boyunca MIC ve 1/2 MIC'de CNB yağı, sinnamaldehit ve linalool ile muamele edildi. İşlenmiş ve kontrol hücreleri, temiz lamellerle kapatılmış cam slaytlara aktarıldı ve bir argon lazeri (λ ex = 488 nm; λ em = 512 ) kullanılarak bir Zeiss LSM 780 sisteminde (Carl Zeiss Micro görüntüleme, Oberkochen, Almanya) 63 x büyütmede görüntülendi. nm) Tub2-GFP ve HeNe lazer için (λ eski = 543 nm; λ em = 605 nm) Htb-RFP için. Hücreler tanımlandı ve her bir döngü fazı kategorisinde numaralandırıldı. İstatistiksel önem, üç bağımsız deneyden hesaplandı.

            istatistiksel analiz
            Tüm deneyler, aksi belirtilmedikçe üç kopya halinde gerçekleştirildi ve istatistiksel analiz için GraphPad Prism7 kullanıldı. Sonuçlar, ortalama ± standart sapma (SD) olarak rapor edildi; farklılıklar , %95 güven aralığında Welch düzeltmesiyle iki kuyruklu eşleştirilmemiş t testi kullanılarak değerlendirildi; bunun için p < 0.05, istatistiksel olarak anlamlı kabul edildi.

            Git: Sonuçlar

            CNB yağı bileşimi
            GC-FID ve GC-MS tarafından analiz edilen CNB yağı, bilinen birkaç bileşen tanımladı. GC-FID tarafından belirlenen pikler ayrıca GC–MS ve daha önce bildirilen RI [ 32 , 34 ] ile doğrulanmıştır . CNB'mizin bileşimi Ek dosya 1 : Tablo S1'de gösterilmiştir (bkz. Ek dosya 2 : Şekil S1), bileşikler için HP-5 sütununda elüsyon sırasına göre listelenmiştir. Ana bileşikler (GC-FID ve GC-MS'den bağıl % pik alanı olarak konsantrasyonlar > 2,0) E-sinnamaldehit (%74), a-karyofilen (%5,3), linalool (%3,9) ve E-sinnamil asetattır (3,8) %). Bilinen işleve sahip küçük bileşenler arasında limonen (%2), öjenil asetat (%0,6), a-pinen (%0,3) ve benzil benzoat (%0,6) bulunmaktadır. Diğer bir minör bileşen p-simendi (%1.4).

            RSY150 ve C. albicans'ın klinik izolatları , CNB yağına farklı yanıt verir.
            RSY150 suşunun ve klinik izolatların CNB yağına göreli duyarlılıkları, bir sıvı mikrodilüsyon yöntemi kullanılarak belirlendi. C. albicans'ın planktonik büyümesilaboratuvar suşları (ATCC 64548 ve RSY150), 125 μg/mL CNB yağı ile etkili bir şekilde inhibe edilirken, kandan izole edilen klinik suş ve ATCC 10231 suşu daha dirençliydi ve üretmek için daha yüksek konsantrasyonlarda (250 μg/mL) CNB yağı gerektirdi. önleyici etki. Kandan izole edilen bu klinik suş, detaylı analiz ve ileri deneyler için seçilmiştir. Kan ve genital enfeksiyonlardan elde edilen klinik izolatlar, CNB yağına karşı değişen duyarlılık göstermiştir. Genel olarak, bir kan izolatı, 500 μg/mL MIC ile CNB yağına dirençliyken, bir genital suş, 1000 μg/mL MIC ile CNB yağına daha dirençli ve diğeri 125 μg/mL MIC ile daha duyarlıydı. mL. Veriler Tabloda özetlenmiştir 2. Mikrotübül motor proteini Kar3 için bir mutant suşu olan RSY35, 125 μg/mL CNB yağında büyüme inhibisyonu gösterdi. Benzer şekilde, RSY150 ve RSY35'in büyümesi, 112.5 μg/mL'lik bir MIC ile sinnamaldehit tarafından inhibe edildi. Her iki suş da 2,46 mg/mL'de MİK'lerle linaloole aynı tepkiyi gösterdi.

            Tablo 2


            Çeşitli MİK değerlerinde referans ve klinik suşların sayısı
            1000 1
            500 1
            250 *1
            125 3 **1 1 1 1 1
            Ayrı bir pencerede aç
            *Diğer tüm deneylerde temsili klinik suş olarak kullanılır

            **Kitin boyaması için test edilmiştir

            C. albicans RSY150 büyümesinin, canlılığının ve zar bütünlüğünün doza bağlılığı
            CNB yağının 24 saatlik bir süre boyunca doza bağımlılığını belirlemek için, YPD ortamında farklı CNB yağı konsantrasyonlarında (15.625–125 µg/mL) büyüme eğrileri oluşturuldu. Büyüme inhibisyonu, MIC'de (125 µg/mL) tam büyüme inhibisyonu ve giderek daha düşük öldürücü olmayan konsantrasyonlarda artan büyüme ile doza bağımlıydı: 62,5 µg/mL (1/2 MIC), 31,25 µg/mL (1/4 MIC) ve 15,625 µg/mL (1/8 MİK) (Şek. 1a), sonraki deneyler için kullanılır.
            İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 40694_2018_46_Fig1_HTML.jpg
            Şekil 1
            CNB yağı, RSY150'de hücre canlılığını azalttı ve hücre zarı bütünlüğünü tehlikeye attı. a RSY150'nin büyüme eğrileri 125, 62.5, 31.25 ve 15.125 µg/mL CNB yağına maruz bırakıldı, absorbans CNB yağının antifungal zaman sürecini göstermek için 30 dakikalık aralıklarla ölçüldü. b ( a ) ' daki gibi CNB konsantrasyonlarına maruz kalan hücrelerin metilen mavisi boyaması, hücre canlılığının azaldığını gösterdi. c Kontrole kıyasla canlı CNB'ye maruz kalan hücrelerin karşılık gelen CFU sayıları. d ( a ) 'daki gibi konsantrasyonlarda CNB yağına maruz kaldıktan sonra 260 nm'de absorbansın bir fonksiyonu olarak hücresel içeriğin sızması, (a ) 'daki hücre zarının doza bağımlı bir uzlaşmasını doğrular.). GC, CNB yağı olmadan inkübe edilen hücrelerin büyüme kontrollerini gösterir. Çift yıldız istatistiksel önemi temsil eder (p < 0.05)

            Farklı konsantrasyonlarda CNB yağı (125-62.5 µg/mL) ile 4 saat boyunca tedaviden sonra logaritmik faza kültürlenen hücrelerin canlılığı, hayati boya metilen mavisi kullanılarak değerlendirildi (Şekil 1b). 1b), hem canlı hem de ölü hücrelere girer. Canlı hücreler boyayı indirgeyebildikleri için [ 50 , 51 ] renksiz hale gelirken, ölü hücreler mavi kalır. Hücreler, her bir CNB yağı tedavisi için (1/2, 1/4 ve 1/8 MIC ve kontrol) CFU tarafından onaylanan CNB yağı tedavisinin ardından canlı değildi. 1/4, 1/8 MIC'de tedavi edilen hücrelere ve kontrole kıyasla 1/2 MIC CNB yağı ile tedavi edilen koloni sayısında önemli bir azalma oldu (Şekil 1c). 1C).

            CNB yağı ile muamele edilmiş RSY150 hücrelerinde membran bozulması, süpernatanda hücresel içeriklerin (OD 600 = 260 nm) sızması olarak değerlendirildi [ 43 ]. Sızan hücresel içeriğin miktarı, CNB yağ konsantrasyonunun bir fonksiyonu olarak 1/8 MIC'den MIC'ye yükseldi (Şek. 1d), tehlikeye giren hücre zarı bütünlüğünün doza bağlı olduğunu gösterir. Pozitif kontrol amfoterisin B, MIC'de sızıntı gösterdi.

            Ölümcül olmayan CNB yağı dozları, C. albicans'ta kitin dağılımını değiştirdi
            Morfolojik değişiklikleri belirlemek için, C. albicans'ın parlak alan görüntülerini , 24 saat boyunca ölümcül olmayan konsantrasyonlarda CNB yağına maruz kalan sabit ve logaritmik fazlarda analiz ettik . Ölümcül olmayan CNB'ye maruz bırakılan durağan faz C. albicans RSY150 hücreleri, kitin dağılımında belirgin değişikliklerle, ancak kontrol hücrelerine kıyasla normal tomurcuklanma ile oval ve şişmişti (Şekil 1b).2bir, d). Sabit faz kontrollü RSY150'nin epifloresan görüntüleri, hücre duvarı ve septal bölge çevresinde kitinin eşit bir şekilde dağıldığını gösterir (Şekil 1a). 2bir, d). Buna karşılık, 62.5 μg / mL'de (1/2 MIC) CNB yağı ile muamele edilen hücreler, yanal hücre duvarında kitin içeriğinde bir artışa ve septal bölgelerde daha yoğun lekelenmeye sahipti (Şekil 1b). 2bir, d). Bu etki, CNB yağının daha düşük konsantrasyonlarında (31.625 μg/mL; 1/4 MIC) yoktu.
            İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı: 40694_2018_46_Fig2_HTML.jpg
            İncir. 2
            CNB yağına maruz kalma, RSY150'de değiştirilmiş kitin dağılımı ile bir hücre duvarı stres tepkisine neden olur. CFW ile boyanmış hücrelerin epifloresan (üst panel) ve parlak alan (alt panel) görüntüleri. Hücreler ( a ) ve ( b )' de YPD'de büyütülürken , ( c )' deki hücreler YPD artı hifal indüksiyonu için %10 serumda büyütüldü. bir RSY150 hücreleri, YPD ortamında 1/2 ve 1/4 MIC CNB yağı ile ve olmadan 24 saat süreyle inkübe edildi ve CFW ile boyandı. b Orta log fazı RSY150, CFW ile boyanmış ve görüntülenmiş 4 saat boyunca MIC ve 1/2 MIC'ye maruz bırakılmıştır. c %10 serumlu YPD'de büyütülen hücreler, ( b ) 'dekiyle aynı konsantrasyona 4 saat maruz bırakıldı, CFW ile boyandı ve görüntülendi. ( d ,e , f ) , sırasıyla ( a , b ve c ) içindeki hücrelerin numaralandırmasını gösteren çubuk grafiklerdir , burada çift yıldız işaretleri p < 0,05'i gösterir. Çubuklar = 5 mikron

            Benzer şekilde, CNB yağının metabolik olarak aktif hücreler üzerindeki etkileri de belirgindi. MIC ve 1/2 MIC'de 4 saat boyunca CNB yağına maruz bırakılan logaritmik faz hücrelerinde, tomurcuk boynu bölgesinde yoğun kitin lekelenmesi ve düzensiz yanal hücre duvarı lekelenmesi vardı (Şekil 1b). 2b, e) tomurcuk ve yan duvarda eşit şekilde boyanan kontrol hücreleri ile karşılaştırıldığında. Ayrıca, MIC'de CNB yağına maruz kalma sırasında, 1/2 MIC'de daha az belirgin hale gelen uzunlamasına hücrelerin sıklığının arttığını gözlemledik (Ek dosya 3 : Şekil S2a, b). Öte yandan, kandan elde edilen klinik izolat, genel olarak RSY150'den daha güçlü boyama gösterdi; MIC ve 1/2 MIC'de CNB yağına maruz kaldıktan sonra tomurcuk boynunda artan yoğunluk ile (Ek dosya 4: Şekil S3a ) . Buna karşılık, RSY150'ye benzer bir MİK'ye sahip olan genital klinik izolat, normal bir kitin dağılımı gösterdi (Ek dosya 4 : Şekil S3b).

            Ölümcül olmayan seviyelerde CNB maruziyeti sırasında değişen fenotipe dayanarak, CNB'nin hifal büyümesi üzerindeki etkisini inceledik. CNB yağı varlığında hif indüksiyonu (%10 serum) sırasında, büyüyen hiflerin büyüyen uçlarında yoğun kitin lekelenmesi vardı. Kitin boyamasının yoğunluğu, MIC'de tedavi edilen hücrelerde daha yüksekti ve 1/2 MIC'de CNB yağ konsantrasyonunun bir fonksiyonu olarak aşamalı olarak azaldı (Şekil 1b). 2ç, f). 1/4 MIC CNB'de CFW boyamasının yoğunluğu kontrol ile karşılaştırılabilirdi, ancak hifal genişliği aynı kaldı.

            Sublethal CNB yağı, C. albicans'ta hücre duvarının yeniden şekillenmesine neden olur
            AFM, hücre yüzeyindeki ultrastrüktürel değişiklikleri görüntülemek ve ilişkili biyofiziksel özellikleri araştırmak için güçlü bir araçtır. Ayrıntılı bir analiz için çok sayıda kuvvet eğrisini (n = 16.536; 128 piksel 2 çözünürlük) kaydeden QI™ modunu seçtik . RSY150'nin temsili QI™ görüntüleri ve karşılaştırılabilir kontrollerle birlikte ölümcül olmayan CNB yağı konsantrasyonlarına maruz kalan bir C. albicans klinik izolatı , Şekil 2'de gösterilmektedir. 3a–d. CNB tedavisinden sonra RSY150 ve klinik izolattaki değişiklikler Tablo'da özetlenmiştir. 3. CNB ile işlenmiş RSY150 ile klinik izolat arasında açık bir fark vardı; RSY150 hücrelerinin %50'si sızıntı ve pul pul dökülme gösterirken, klinik izolat artan yüzey pürüzlülüğü ile sızıntı gösterdi. Bu hücrelerde pul pul dökülme genellikle aberasyon şeklinde hücre üzerindeki küçük bir alanla sınırlı kalırken, yüzeyin geri kalan kısmında çok az değişiklik görüldü. CNB yağına maruz kalan klinik izolat, sızıntı olan veya olmayan pürüzlü hücre yüzeylerine sahipti.
            Resim, çizim vb. içeren harici bir dosya. Nesne adı: 40694_2018_46_Fig3_HTML.jpg
            Şek. 3
            1/2 MIC CNB yağına maruz bırakılan RSY150 C. albicans'ın yüzey yeniden modellemesi. RSY150 ve kandan alınan klinik izolat, 24 saat boyunca 1/2 MIC (62.5 μg/mL) CNB yağı ile muamele edildi, biriktirildi ve AFM görüntüleme için PLL kaplı kapak fişlerine sabitlendi. Kontrol (1 μm; 128 piksel 2 ) kontrol ve CNB yağı ile tedavi edilen hücrelerin kontrol ( a , c ) ve tedavi edilen ( b , d ) için düşük çözünürlüktedir. C. albicans, tedavi edilen hücrelerde sızıntı (ok başları) gösteriyor. Kontrol ( e , g ) ve CNB ile işlenmiş ( f , h ) C. albicans için hücre yüzeyinin (kutulu alan) yüksek çözünürlüklü (1 μm) yükseklik görüntüleritedavi edilen RSY150 suşuna kıyasla tedavi edilen klinik izolatta artan yüzey pürüzlülüğünü ortaya çıkarır. ( i , j , k , l ) Karşılık gelen yükseklik görüntülerinden yüksek çözünürlüklü (1 μm) adezyon haritaları. Çubuk a–d = 1 mikron; Çubuk e–l = 200 nm Tablo 3


            AFM tarafından ortaya çıkarılan CNB yağına maruz kalan C. albicans hücrelerinde çeşitli değişiklikler
            RSY150 (n = 24) 9 3 12 – –
            Klinik suşlar (n = 21) 1 1 1 5 13
            Ayrı bir pencerede aç
            Kontrol hücrelerinde görsel değişiklik olmadı

            Candida albicans RSY150 ve klinik izolat, CNB yağına yanıt olarak hücre şişmesi ve önemli hücre duvarı yapısal ve mekanik değişiklikler sergiledi (Şekil 1). 3). RSY150'nin QI™ AFM'si (n = 24) ve 1/2 MIC CNB yağına maruz bırakılan kandan (n = 21) bir klinik izolat, hücre hacmi, pürüzlülük, yüzey yapışması ve hücre duvarı esnekliğinde bariz değişiklikler gösterdi.

            Tedavi edilmemiş RSY150'nin görüntüleri (Şek. 3a, c) 1,65 ± 0,19 μm yüksekliğe ve 9,41 ± 1,7 μm 3 hücre hacmine sahip normal bir oval hücre ortaya çıkardı , bu önemli ölçüde (p < 0,0001) 2,18 ± 0,31 μm yüksekliğe ve 18,4 ± 4,7 μm hacme yükseldi 3 , sırasıyla, CNB yağ tedavisinin ardından. Klinikte boy (2,07 ± 0,29 μm - kontrol 1,83 ± 0,27 μm) (p = 0,01) ve hacim (hacim: tedavi edilen 12,7 ± 5,9 μm3 - kontrol 16,2 ± 4,7 μm3 ) (p = 0,047) izolat, CNB yağ tedavisi ile anlamlıydı, ancak benzer tedavi ile RSY150'ninkinden daha az belirgindi.

            Her iki suşun kontrol hücreleri (Şek. 3e, g) pürüzsüz ve homojen bir yüzey ortaya çıkardı. CNB yağına maruz kalmanın ardından klinik izolatın hücre yüzeyi pürüzlülüğünde (5.4 ± 1.0 nm) kontrole (2.7 ± 1.2 nm) kıyasla önemli bir artış (p = 0.015) vardı, oysa RSY150 (Şek. 3e–h), kontrol hücreleriyle (işlenmiş 4,9 ± 1,08 nm ve kontrol 3,52 ± 1,77 nm) karşılaştırıldığında önemli bir değişiklik göstermedi (p = 0,2432). Bu sonuçlar Tabloda özetlenmiştir.

            4. Tablo 4

            RSY 150'nin ultrayapısal özelliklerinin ve kandan alınan klinik izolatın karşılaştırılması
            Yükseklik (nN) 5,5 ± 0,3 7,1 ± 0,5 5,7 ± 0,4 7,6 ± 0,6
            Hacim (um 3 ) 9,4 ± 1,7 18,4 ± 4,7 16,2 ± 4,7 12,7 ± 5,9
            Pürüzlülük (nm) 3,5 ± 1,8 4,9 ± 1,1 2,7 ± 1,2 5,4 ± 1,0
            Ayrı bir pencerede aç
            Hücre yüzeyinin doğru yapışkan ölçümleri için, hücre eğriliğinden kaynaklanan artefaktları ortadan kaldırmak için hücrelerin üst ortasında 1 μm QI™ AFM görüntüleri (128 piksel 2 çözünürlük) alındı. Hem RSY150'nin (işlenmiş 7,1 ± 0,5 nN - kontrol 5,5 ± 0,3 nN) hem de klinik izolatın (işlenmiş 7,6 ± 0,6 nN ve kontrol 5,7 ± 0,4 nN) yapışkan özellikleri önemli ölçüde artmıştır (RSY150 p = 0,0016, klinik izolat p = 0.0025) CNB yağına yanıt olarak. Figür 3b, f, j ve d, h, l, sırasıyla RSY 150'nin ortasındaki tüm hücreleri, yüksek çözünürlüklü görüntüleri, pürüzlülüğü ve yapışkan kuvvetleri ve sublethal (62,5 μg/mL) varlığında 24 saat boyunca büyütülmüş klinik izolatları gösterir. ) CNB yağı. CNB yağına maruz kalma hücre şeklini değiştirmiş, ortalama hücre hacmini ve pürüzlülüğü arttırmıştır (Şekil 1b). 3j, f), RSY150 (tedavi edilen 7,8 ± 0,9 GPa - kontrol 4,7 ± 0,4 GPa) ve klinik izolat (işlenen 15,0 ± 2,7 GPa - kontrol 8,1 ± 0,7 GPa) için kendi kontrollerine kıyasla iki kat daha fazla esneklikle . Masa 5RSY150 ve klinik izolattaki bu farklılıkların bir özetini gösterir.

            Tablo 5
            RSY150'nin biyofiziksel özelliklerinin ve kandan alınan klinik izolatın karşılaştırılması
            Yapışma (nN) 5,5 ± 0,3 7,1 ± 0,5 5,7 ± 0,4 7,6 ± 0,6
            Esneklik (GPa) 4,7 ± 0,4 7,8 ± 0,9 15,0 ± 2,7 8,1 ± 0,7
            Ayrı bir pencerede aç

            CNB yağına maruz kalma, C. albicans'ın hücre duvarını bozan ajanlara duyarlılığını artırır
            Hücre duvarı bütünlüğünün CNB tarafından tehlikeye atılıp atılmadığını belirlemek için RSY150, 1/2 MIC ve 1/4 MIC'de hücre duvarı bozucu ajanlar CR ve CFW'ye maruz bırakıldı. CNB ile muamele edilmiş hücrelerde, kontrol ile karşılaştırıldığında, tehlikeye atılmış hücre duvarı bütünlüğünü yansıtan daha yüksek hassasiyet gözlendi (Şekil 1b). 4a) 1/2 MİK'de, kademeli olarak 1/4 MİK'e düşer (Şek. 4B). Pozitif kontroller olarak, CNB yağı tedavisine duyarlılıkları için hücre duvarı bütünlüğü ve duvar organizasyonu ve biyogenez ile ilgili genleri olmayan mutantları analiz ettik. Test edilen mutantlar aşağıdaki nakavtlara sahipti: VPS28 , vakumlu protein sınıflandırması için gerekli bir VPS faktörü; CRH11 , bir GPI bağlantılı hücre duvarı transglikosilazını kodlar; oksidatif stres, hücre duvarı biyojenezi ve morfogenez ile ilgili bir fonksiyonu kodlayan SSU81 ; ve hücre duvarı ve zarının N-bağlı bir mannoproteinini kodlayan DFG5 . Tüm bu mutantlar, CNB'nin hücre duvarı bütünlüğü üzerindeki etkisini daha da doğrulayan, vahşi tip suştan (CaSS1) daha düşük MIC ile CNB yağına karşı genelleştirilmiş bir duyarlılık sergiler (Şekil 1b). 4C). İlişkili MIC, tüm mutantlar için iki kat azalarak 125 μg/mL'den 61,5 μg/mL'ye düştü.
            Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı: 40694_2018_46_Fig4_HTML.jpg
            Şekil 4
            CNB ile muamele edilmiş RSY150 C. albicans, bir hücre duvarı stres tepkisi sergiler. Logaritmik faz RSY150 hücreleri, 24 saat boyunca 1/2 ve 1/4 MIC CNB yağıyla veya yağsız olarak işlendi. a 105 , 104 ve 103 CFU'da tedavi edilen ve kontrol hücreleri, CFW ve CR içeren YNB komple ortam agarında görüldü ve 2 gün sonra incelendi. Tedavi edilen hücreler, hücre duvarı stres faktörlerine karşı daha fazla hassasiyet gösterdi. BCR ve CFW plakalarındaki koloni sayısı, yağ konsantrasyonunun bir fonksiyonu olarak azalan doza bağlı bir etki gösterir. 1/2 MIC CNB yağı, 1/4 MIC'den daha etkiliydi ve tedavi edilmemiş kontrollere kıyasla 1/2 MIC yağ tedavisi arasında ** önemli bir fark vardı (p < 0.05). Hücre sayısı, yalnızca YNB ortam agarında büyütülen işlenmiş hücrelerle normalleştirildi. c Yabani tip arka plan suşu (CaSS1) ve hücre duvarı kusurlu mutantlar ( SSU81, CRH, DFG ve VPS ), bir MİK tahlilinde CNB yağının iki kat artan seyreltilmesine maruz bırakıldı, bu da CNB yağına genel duyarlılık gösterdi ve orta düzeyde bir hücre duvarı gösterdi stres tepkisi

            CNB yağı, MIC ve alt MIC'de C. albicans'ta iğ kusurlarına neden olur
            Hem Tub2-GFP'yi hem de Htb-RFP'yi ifade eden RSY150 suşu, CNB yağına maruz kalan bölünen hücrelerde mitotik iş milini görselleştirmek için LSCM tarafından görüntülendi. Muamele edilmemiş hücrelerde, kontrol RSY150 suşu için iş milinin uzunluğu değişmiştir, ancak sürekli olarak ana ve yavru hücreler arasındaki mesafeyi kaplamıştır (Şekil 1b). 5a) ve nükleer göç normaldi. Buna karşılık, bu iyi tanımlanmış mitotik iğcikler, MIC'de CNB yağına maruz kalan RSY150 hücrelerinde eksikti. Ayrıca, bu hücrelerdeki Tub2-GFP floresansı, sürekli olarak, anne ve kızı hücreler arasındaki vahşi tip iğ oluşumu modelini göstermede başarısız oldu (Şekil 1b). 5B). Bunun yerine, Tub2-GFP, nükleer bölünme geçiren hücrelerde genellikle azalmış flüoresansa sahipti ve yalnızca birkaç flüoresans lekesi görülebiliyordu, bu da mitotik milin bozulduğunu gösteriyor. Alt MIC CNB yağına maruz kalan hücreler, hücrelerin çoğu iyileşme aşamasındayken ve flüoresan yamalar veya tübülin agregaları olarak gözlenen iğ kusurlarını azalttı (Şekil 1b). 5C).
            Resim, çizim vb. içeren harici bir dosya. Nesne adı: 40694_2018_46_Fig5_HTML.jpg
            Şekil 5
            RSY150 C. albicans'ta CNB yağına maruz kalma, RSY150'de iğ kusurlarına ve gecikmiş bir hücre döngüsüne neden oldu. Orta logaritmik faz RSY150 hücreleri, 4 saat boyunca MIC ve 1/2 MIC yağı ile muamele edildi ve LSCM (Tub2-GFP λ eski = 488 nm; λ em = 512 nm ve Htb-RFP λ eski = 543 nm; λ em) ile canlı olarak görüntülendi. = 605 nm). RSY150, tomurcuklanan hücrelerde nükleer ve iğ lokalizasyonu açısından incelendi. AMIC ve 1/2 MIC CNB yağla işlenmiş hücrelerin ve işlenmemiş kontrolün iğ morfolojileri. Kontrol hücreleri, mitoz (ok başları) sırasında normal iğ oluşumu gösterirken, MIC ile tedavi edilen hücrelerde, mitotik bir iğ (küçük ok başları) olmayan bölünen hücrelerin çoğunluğu vardı. 1/2 MIC CNB yağı ile tedavi edilen hücrelerde iğ kusurları azaldı. İğ kusuruna rağmen hücreler mitozu tamamladı. Görüntüler, üç bağımsız deneyden temsilidir. Çubuk = 5 mikron. b MIC ve 1/2 MIC CNB yağı ile tedavi edilen hücrelerin ve işlenmemiş kontrollerin hücre döngüsü analizi. MIC CNB yağında tedavi edilen hücrelerin %14'ü, kontrol hücreleri için %10'a kıyasla anafazda iken, 1/2 MIC CNB yağına maruz bırakılan hücrelerin %12'si anafazdaydı. CAnafazdaki tedavi edilmiş ve kontrol hücreleri için sayılan hücre sayısı çizilmiştir. Çift yıldız istatistiksel önemi temsil eder (p < 0.05). Her tedavi için 250 hücre analiz edildi

            Orta logaritmik faza büyütülen ve 4 saat boyunca yağa maruz bırakılan RSY150 hücreleri, ana hücrelerde ve tomurcukta nükleer bölünme ve tübülin dağılımı modellerini görüntülemek için LSCM ile görüntülendi. Tek çekirdekli tomurcuklanan hücreler, G1 veya S fazındakileri temsil eden mitoz öncesi olarak kabul edildi. Ana ve tomurcuklanan hücreleri çaprazlayan çekirdeklere sahip hücrelerin, mitozun anafaz aşamasında olduğu kabul edildi. Son olarak, hem ana hem de tomurcuklanan hücrelerde ayrı çekirdeklere sahip olan hücrelerin, mitotik sonrası bir faz olan G2/M'de olduğu kabul edildi. RSY150 kontrol hücreleri için popülasyonun %52'si G1 veya S fazındaydı; Hücrelerin %36'sı mitoz geçirmişti; ve son %10 anafazdaydı (Şek. 5M.Ö). Öte yandan, CNB yağının MIC'si ile muamele edilen RSY150, hücre döngüsü dağılımında gözle görülür farklılıklar sergiledi; %39'u mitoza başlamadı, %48'i mitozu tamamladı ve %14'ü anafazda, hala nükleer bölünme geçiriyor (Şekil 1b). 5C). 1/2 MIC ile tedavi edilen hücreler GI fazında (%38) bulunurken, baskın hücre sayısı G2/M fazındaydı ve anafaza giren hücre sayısında herhangi bir değişiklik olmadı. MIC'de CNB yağı ile tedavi edilen hücreler, psödohifal oluşumu ile genişlemiş hücreler gösterdi, ancak etki, büyük tomurcuklanan hücrelerin gözlemlendiği 1/2 MIC'de tedavi edilen hücrelerde daha az belirgindi (Ek dosya 3: Şekil S2a, b ) . Veriler, CNB yağının, anafazda hücre döngüsünün durmasına yol açan tubulin depolimerizasyonunu indüklediğini açıkça göstermektedir.

            Cinnamaldehit ile muamele edilmiş C. albicans, depolimerize tübülin ile CNB yağı ile muamele edilmiş hücrelere (Ek dosya 5 : Şekil S4) benzer morfolojik özellikler gösterdi ve bu da mitotik iğciklerin yokluğuna neden oldu. Genel olarak etki, CNB yağı ile tedavi edilenlere kıyasla sinnamaldehit ile tedavi edilen hücrelerde daha belirgindi. MIC'de sinnamaldehite maruz bırakılan hücreler, kontrole (%9.6) kıyasla anafazda önemli ölçüde artan hücre yüzdesi (%15.8) gösterirken, daha önce bildirildiği gibi linaloole maruz bırakılan RSY150 hücreleri, hücre döngüsünün G1 fazında tutuklandı [ 20]. 4 saat sonra MIC'de hücre duvarında tam bozulma oldu, kontrollere kıyasla depolimerize tübüline sahip hücreler vardı, ancak hücreler 1/2 MİK'de bozulmamış hücre duvarlarıyla bir miktar tübülin floresansı gösterdi (Ek dosya 5: Şekil S4 ) .

            Git: Tartışma

            C. albicans'ın hücre duvarı, mantar etkileşimlerini modüle eden ve hücre bütünlüğünü koruyan, konakçı bağışıklık sistemine ve toksik ajanlara karşı ilk savunma hattıdır [ 52-55 ]. C. albicans maya hücre duvarı üç ana bileşen içerir: mannoproteinler (~ %39), β-glukanlar (~ %59) ve kitin (~ %2), tepki olarak sürekli olarak yeniden şekillenen oldukça dinamik bir moleküler mimariye katkıda bulunur hücre yüzeyi etkileşimlerine [ 53 – 55]. Hücre duvarı bütünlüğü (CWI) yolu, hücre döngüsü ilerlemesini ve diğer gerekli olayları düzenleyerek hücre duvarı biyosentezi ve aktin organizasyonuna aracılık etmek için MAPK kaskadından sinyal göndererek çevresel stresin neden olduğu hasarı telafi eder [56 – 59 ] . Hücre duvarı stres faktörlerine yanıt olarak, örneğin β-1,3-glukan sentazın yarışmalı olmayan bir inhibitörü olan kaspofungin antifungal ilacı [ 60-62 ] , CWI yolunun aktivasyonu, hücre duvarını kitin seviyelerini artırarak güçlendirebilir . Candida [ 63 ] ve C. glabrata [ 64 ].

            Hücre duvarı ve zar stresi
            Sabit fazdaki CNB yağı ile muamele edilmiş RSY150 hücreleri, tomurcuklanan hücrelerin yan duvarında bulunan düzensiz bir kitin dağılımına sahipti (Şekil 1b). 2A). Bu tür etkiler, %10 serum mevcudiyetinde büyütülen metabolik olarak aktif hücrelerde belirgin hale geldi (Şekil 1a). 2c, f), hif ucunda yoğun kitin lekelenmesi ile. Büyüyen hif ucunda hipoozmotik basıncın kitin sentezini veya polimerizasyonunu indüklediği yüksek şeker veya tuz konsantrasyonlarına maruz kalan hücreler için benzer boyama modelleri bildirilmiştir [ 23 ]. Bu fikirle tutarlı olarak, RSY150'nin daha büyük hücre hacmidir (Şekil 1). 3) ve SSU18 mutantının duyarlılığı (Şek. 4c) CNB yağına maruz kalma. Strese yanıt olarak kitin ile hücre duvarı takviyesi mayada iyi bilinen bir olgudur [ 62 , 64 – 67 ]. Dirençli klinik suşların çoğunun, hücre duvarını güçlendiren ve onları hücre duvarı hedefli antifungallere karşı daha dirençli hale getiren daha yüksek bir genel kitin içeriğine sahip olduğu bilinmektedir [ 68 ]. Beklendiği gibi, metabolik olarak aktif klinik izolat, hem kontrol hem de tedavi edilen hücreler için RSY150'den daha fazla kitin gösterdi (Ek dosyalar 3 , 4 : Şekiller S2, S3), klinik suşta hücre duvarı takviyesini doğruladı.

            Kitin hücre duvarının nanomekanik özelliklerini tanımlamada önemli bir rol oynar [ 25 , 27 , 69 ] ve β-1,3 D-glukan hücre şeklini, mekanik sertliği ve ozmotik basınca direnci korumada kritiktir [ 4 , 70 ]. CNB yağına maruz kalma, önceki çalışmalarla tutarlı olarak, düzensiz bir kitin dağılımına ve artan esnekliğe sahip ozmotik olarak kırılgan, şişmiş hücreler üretti [ 25 , 27 , 52 , 59 ]. Bu çalışmada bildirilen elastikiyet değerleri, fiksasyondan çapraz bağlanmayı yansıtacak şekilde kıyaslandığında yüksektir [ 71 ]. β-1,3- d'nin inhibisyonuS. cerevisiae'de sinnamaldehit veya C. albicans'ta kaspofungin tarafından -glukan sentaz, sırasıyla hücre duvarında β-1,3-glukanda azalma [ 22 ] ve hücre duvarında kitin içeriğinde artışla sonuçlanır [ 25 ]. Ayrıca kitin ve β-glukan çapraz bağlanmasında ( chr1chr2Δ ) kusurlu mutantlar, yapı ve bileşime göre değişen hücre duvarı esnekliğine sahiptir [ 60 ].

            Hücre duvarı kitin ve glukanlara ek olarak, C. albicans'ın yüzeyi , hücre iletişimi, adezyon ve mikrobiyal enfeksiyonda çok önemli bir rol oynayan adezinler adı verilen proteinlerle dekore edilmiştir [ 72 , 73 ]. Birçok adezin, hücre yüzeyinde homojen olarak dağılmış mannoproteinlerdir [ 74 , 75 ]. Hücre duvarı stresi, sıcaklık değişimi, antifungal ajanlara maruz kalma, konakçı etkileşimi ve biyofilm oluşumunun hücrelerin yapışkan özelliklerini değiştirdiği gösterilmiştir [ 67 , 76] .]. Bu çalışmadaki yapışma kuvvetleri, hücre yüzeyi ile hidrofilik, negatif yüklü silikon nitrür AFM ucu arasındaki etkileşime dayanmaktadır. CNB yağına maruz kalma, pürüzlülükteki eşzamanlı değişikliklerle kanıtlandığı gibi, hücre duvarının yeniden şekillenmesine atfedilebilecek hücre yapışmasında orta derecede bir artışa neden oldu. Yapışmadaki değişiklikler, adezinlerin kaybını veya yeniden düzenlenmesini veya yüzey şekerlerinin yeniden düzenlenmesini yansıtabilir [ 25 , 27 , 29 ].

            Hücre duvarı stresi, yalnızca kitin dağılımı ve ekspresyonundaki değişikliklerle değil, aynı zamanda polarize büyüme ve hücre döngüsünün durmasına ve mantar ölümüne yol açan hücre duvarı bozucu ajanlara karşı orta derecede hassasiyetle karakterize edildi [57 ] . Kongo Kırmızısı ve Calcofluor White, hücre döngüsünün durmasına yol açan sitokinetik bir kusur oluşturmak için kitin ve β-1,3-glukan sentezlerini hedef alır [ 77 , 78 ]. Gecikmiş veya tutuklanmış bir hücre döngüsü, depolimerize mikrotübüller [ 35 , 82 , 83 ] ile karakterize edilen psödohifal hücrelerin [ 79 – 81 ] oluşumuyla polarize büyüme ile sonuçlanır.]. Böyle bir morfoloji, mikrotübül polimerizasyonundaki kusurlarla birlikte CNB yağına maruz kalan hücre popülasyonunun %30'unda gözlendi.

            Mil kusurları
            Mikrotübüller hücre bölünmesinin merkezinde yer alır, mitotik iği oluşturur ve nükleer hareketi koordine eder [ 82 , 84 , 85 ]. Candida'da çekirdeklerin tomurcuk boynundan mitotik öncesi hareketi ve ardından çekirdeklerin ayrılması mikrotübüller tarafından koordine edilir [ 86 ] . Normal hücrelerde, tomurcuklar henüz küçükken nükleer bölünme tamamlanır, öyle ki çekirdeksiz daha büyük tomurcuklanan hücreler asla gözlenmez .]. Kontrol hücrelerinde, biri ana ve tomurcuklanan hücrelerden geçen, diğeri ise sadece ana hücrelerde olmak üzere iki farklı hücre altı mikrotübül yapısı gözlendi. Anafaz ve G2 hücre döngüsü tutuklamasının yanı sıra daha belirgin bir filamentli büyüme, CNB'ye maruz kalmanın ardından belirgindi (Şekil 1b). 5AC). Mikrotübül bozulmasıyla ilişkili hücre döngüsü kusurları, Htb-RFP ve Tub2-GFP'nin sırasıyla çekirdeği ve mikrotübülleri vurguladığı CNB ile muamele edilmiş RSY150'de kolayca görselleştirildi. MIC'de CNB ile tedaviden dört saat sonra, log faz hücreleri, flüoresan yamalar veya tübülin agregaları olarak gözlemlenen mitotik iğleri kesmiştir (Şekil 1b). 5A). Büyük tomurcuklanan hücreler, ana hücreyle sınırlı nükleer boyanmaya sahipti (Şekil 1b). 5a, ok). Bu sonuçlar, tubulin polimerizasyon inhibitörlerinin ve A kar3/Δkar3 mutantlarının benzer fenotiplere sahip olduğu önceki gözlemlerle tutarlıdır [ 35 , 85 ]. MIC'de CNB'ye maruz kalan hücrelerde anafaz tutuklamasını gözlemliyoruz, kontroldeki %10'a kıyasla hücrelerin %14'ü anafazda, bu etki 1/2 MIC'de azalıyor. MIC sinnamaldehid ile tedavi edilen hücreler, anafazda hücrelerin %15'ine sahipti, bu, anafazda hücrelerin %17'sine sahip olan ve polarize büyüme sergileyen Δ kar3/Δkar3 mutantından biraz daha azdı [ 35]. Kar3, nükleer füzyon ve muhtemelen mitoz sırasında mikrotübülün kaymasına aracılık edebilir ve iğ mikrotübülleri ile etkileşerek kutuplarda içe doğru yönlendirilmiş bir kuvvet üreterek CIP8 ve KIP1'in dışa doğru kuvvetini antagonize eder [36 ] . Δ kar3/Δkar3 mutantı (RSY35), CNB yağına vahşi tipten daha dirençli değildir, bu da Kar3'ün muhtemelen CNB yağının hedefi olmadığını düşündürür.

            CNB yağı ile muamele edilmiş RSY150'de MIC'de psödohifal büyüme gözlemledik; bu etki, 1/2 MIC'de daha az belirgin hale gelen bir etki, hücre duvarı stresi yaşayan mayanın yaygın bir tepkisi [87 ] . Örneğin, S fazındaki veya mitozdaki hücreleri durduran toksinler ve kimyasallar, CWI yolunun aktivasyonu nedeniyle polarize büyüme gösterir [ 57 , 88 , 89 ]. CWI yolu, stresi yönetmek için MAPK kaskadını aktive eder ve bileşenleri, hücre döngüsünü kontrol etmede kilit unsurlardır. Üç MAPK yolu vardır, yani; feromon yanıt yolu, yüksek osmolaliteli gliserol (HOG) yolu ve PKC1 aracılı yol [ 88 , 89 ]. Artan hassasiyetSSU81 nakavt mutant (Şek. 4c) HOG yolunun CNB yağı varlığında aktive edildiğini öne sürer. Stres altında, bu yollar ve hücre döngüsü kontrol noktaları arasında çapraz konuşma vardır, bu da hücre döngüsünün gecikmesine [ 88 ] ve maya ve psödohifal hücrelerinin bir karışımına neden olur (Ek dosya 3 : Şekil S2a, b).

            CNB yağ bileşenlerinin etkisi
            CNB yağının çok bölgeli etkisi, hem ana (sinnamaldehit) hem de küçük bileşenlerine bağlanabilir. Sinnamaldehitin , bu çalışmada belirgin bir iğ kusuru ve anafaz durması ile birlikte gözlemlediğimiz hücre zarı ve duvar bütünlüğünü bozduğu gösterilmiştir [ 16 ]. Limonen (%2), öjenil asetat (%0.6), linalool (%3.9) ve benzil benzoat (%0.6) içeren küçük bileşenler de CNB yağı antifungal aktivitesine katkıda bulunur. Bu bileşenlerin yağın genel etkisini değiştirmeye yönelik sinerjistik, katkı maddesi veya antagonist aktivitesi henüz keşfedilmemiştir. Bununla birlikte, önceki raporlara göre, bu bileşenler hücre zarını hedef alır ve hücre ölümüne yol açan akışkanlık ve geçirgenlik dahil olmak üzere işlevini modüle eder [ 16 – 20]. Limonenin (%2) S. cerevisiae'de hücre duvarını etkilediği [ 90 , 91 ] ve p-simenin (%1.4) üreme tüpü oluşumunu engellediği ve hücre zarı bütünlüğünü değiştirdiği [ 92 ] bildirilmiştir. Öjenil asetat ve linalool germ tüpü oluşumunu inhibe ederek anti-virulans aktivite sergiler ve linalool'ün GI fazında hücre döngüsünü durdurduğu rapor edilmiştir [ 20 ]. Bu tür araştırmalar, CNB yağındaki yalnızca %0,6-5'teki mevcudiyetlerine kıyasla etkilerini üretmek için daha yüksek (mg) CNB yağ bileşenleri konsantrasyonları kullandı. CNB petrol bileşenleri arasında sinerji olasılığı devam etmektedir.

            Bir antifungal olarak CNB yağı
            Bu çalışmada gözlemlenen hücre zarfı kusurlarının çoğundan CNB yağının ana bileşeni olan sinnamaldehitin (% 75) sorumlu olduğunu öneriyoruz. Hücre zarfı mutantları ve hücre stres etkeni analizleri, hücre duvarının kitin tarafından takviye edilerek orta derecede etkilendiğini göstermektedir. Ayrıca, tüm hücre zarfı mutantlarının hassasiyeti, kimyasal heterojenliği ile tutarlı olarak CNB yağı için birden fazla hedefi gösterir. Verilerimiz ilk kez β tübülinin depolimerizasyonunu CNB yağının MIC'sinde hücre döngüsü durmasına yol açtığını bildiriyor. Bu çalışmanın yeni bir bulgusu olan mitotik iğ kusurunu sinnamaldehite atfediyoruz. Etki, MIC'de güçlüydü ve CNB yağına veya sinnamaldehite maruz kalan hücrelerde 1/2 MIC'de azaldı. Membran bozulmasının anormal aktin filamentlerine yol açabileceğini öneriyoruz, aktinin zarla birleşmesi ve sonuçta mitotik iği bozarak hücre döngüsünün durmasına neden olan mikrotübül depolimerizasyonu sayesinde. Bu düşünce bir bulguyla desteklenmektedir.İğ oryantasyonu için hem sitoplazmik mikrotübüllere hem de aktin filamentlerine ihtiyaç duyulan S. cerevisiae [ 93 ], ancak aktinin tubulin depolimerizasyonundaki rolünü belirlemek için daha fazla çalışma gereklidir.

            Özetle, CNB'nin antifungal etkisini, hücre duvarı, zar ve hücre döngüsü makineleri dahil olmak üzere çok sayıda hücresel bölgeyi hedefleyerek uyguladığını ve sonuçta daha fazla çalışma gerektiren bir mekanizma olan hücre döngüsü durmasının neden olduğu hücre ölümüne yol açtığını öneriyoruz.

            Git: Sonuçlar


            Sonuç olarak, bu çalışmada kullanılan CNB yağı, çoklu hücresel bölgeleri hedefleyen değişen miktarlarda terpenoidler, fenoller ve aldehitlerin bir karışımından oluşmaktadır. Birlikte ele alındığında, verilerimiz uçucu yağların antifungal alternatifler olarak hizmet edebileceğini veya antifungal dirençle savaşmak için sentetik antifungal ajanlarla kombinasyon halinde kullanılabileceğini göstermektedir.


            Git: Ek belgeler


            Ek dosya 1: Tablo S1. CNB yağının kimyasal bileşimi. (59K, xls)

            Ek dosya 2: Şekil S1. CNB yağının gaz kromatogramı. E-sinnamaldehit ve a-karyofilen için RI değerlerinde yüksek sapma, CNB yağındaki yüksek konsantrasyonundan kaynaklanır, bu da zirvenin Gauss olmayan davranışına ve geç elüsyon ile düşük konsantrasyona neden olur. (230K, tif)

            Ek dosya 3: Şekil S2. ( a ) RSY150'ye maruz kalan CNB yağında hücre döngüsü stresine bağlı psödohif. MIC ve 1/2 MIC'de CNB yağına 4 saat maruz kaldıktan sonra orta log fazı RSY150, CFW ile boyandı. Görüntüler epifloresans (üst panel) ve parlak alan (BF; alt panel) şeklindedir. Çubuk = 5 mikron. (b) (a)'dan kontrol, MIC ve 1/2 MIC'deki hücrelerin miktar tayini. Çift yıldız, p < 0,05'i temsil eder. (1.1M, tif)

            Ek dosya 4: Şekil S3. (a) CNB yağına maruz kalan klinik izolat, artan kitin içeriği gösterdi. MIC ve 1/2 MIC'de CNB yağına 4 saat maruz kaldıktan sonra log fazındaki kandan klinik izolat, CFW ile boyandı. Görüntüler CFW'yi (üst panel) ve parlak alanı (BF; alt panel) temsil eder. Çubuk = 5 mikron. (b) RSY150 ile karşılaştırılabilir MİK değerine sahip genital klinik izolat, normal bir kitin dağılımı göstermiştir. (1.5M, tif)

            Ek dosya 5: Şekil S4. Sinnamaldehit ve linalool ile muamele edilmiş C. albicans'ın iğ morfolojisi . MIC ve 1/2 MIC cinnamaldehyde ve linolool'e 4 saat maruz kaldıktan sonra orta log faz hücrelerinin canlı LSCM'si. MIC'de sinnamaldehit ile muamele edilmiş C. albicans , MIC'de CNB yağı ile muamele edilmiş olanlara benzer bir iğ morfolojisi gösterirken, linalool ile muamele edilmiş hücreler, azalmış hücre boyutuyla MIC'de tam bir tübülin yokluğu gösterdi. Hem sinamaldehit hem de linalool için 1/2 MIC'de, tübülin ekspresyonu, çekirdeğin yakınında flüoresan noktalar olarak ortaya çıktı. Çubuk = 5 mikron. (795K, tif)


            Git: Yazar katkıları


            AFM deneylerini yürüten ZS, MİK belirleme ve ilgili veri analizinden sorumluydu. AAG, esansiyel yağları kullanma fikrini tasarladı ve el yazmasına entelektüel katkı sağladı. TS tüm deneyleri tasarladı ve LSCM, hücre duvarı stres deneylerini gerçekleştirdi ve makalenin ilk taslağını yazdı. MW, nakavt suşları, JM klinik suşları sağladı ve her biri, veri yorumlama ve el yazmasına entelektüel girdi sağladı. TESD ilk araştırma önerisini yazdı, çalışmayı denetledi, entelektüel girdi sağladı ve taslağı düzenledi. Tüm yazarlar son makaleyi okudu ve onayladı. teşekkürler


            Bu çalışma için RSY150 ve RSY35'i sağladığı için ABD, Brown Üniversitesi, Moleküler Mikrobiyoloji ve İmmünoloji Bölümü'nden Dr. Richard J. Bennett'e minnettarız. CNB yağının GC-FID ve GC-MS analizi için Rebecca Jameson'a ve glukanazla işlenmiş C. albicans görüntüleri için Cheghaf Madarati'ye teşekkür ederiz . Rekabet eden çıkarlar


            Yazarlar, rekabet eden çıkarları olmadığını beyan eder. yayın izni


            Uygulanamaz. Etik onay ve katılım onayı


            Aşağıdaki kurumlardan gelen komiteler bu çalışmayı onayladı: Regina Üniversitesi'nin araştırma etik kurulu ve Regina Qu'Appelle Sağlık Bölgesi. Numuneler rutin bakımın bir parçası olarak alındı ​​ve anonimleştirildi, bu nedenle etik yönergelere göre, artık kişisel veri olarak kabul edilmediğinden hasta onamı için bir feragat verildi. Finansman


            Bu çalışma, TESD'ye (228206-07) Ulusal Bilim ve Mühendislik Araştırma Konseyi (NSERC) hibesi ve MW'ye (950-228957) bir NSERC Kanada Araştırma Başkanı tarafından desteklenmiştir. TESD, Kanada Yenilik Vakfı (CFI) tarafından desteklenmiştir. TS kısmen Fen Fakültesi ve TESD'nin CFI IOF'u tarafından desteklenmiştir. ZS kısmen Regina Üniversitesi Lisansüstü Eğitim ve Araştırma Fakültesi tarafından desteklenmiştir. Yayıncının Notu


            Springer Nature, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.

            Git: Dipnotlar


            Elektronik yardımcı malzeme

            Bu makalenin çevrimiçi sürümü (10.1186/s40694-018-0046-5), yetkili kullanıcılara sunulan ek materyal içermektedir.


            Taranum Sultana ve Tanya ES Dahms, deneylerin tasarımına, öğrenci gözetimine ve makale yazımına eşit derecede katkıda bulundu.


            Git: Katılımcı Bilgileri


            Taranum Sultana, E-posta: ac.anigeru@anatlus.munarat .

            Tanya ES Dahms, E-posta: ac.anigeru@smhad.aynat .

            Git: Referanslar

            1. Clark TA, Slavinski SA, Morgan J, Lott T, Arthington-Skaggs BA, Brandt ME, et al. Bir devlet hastanesinde Candida parapsilosis kan dolaşımı enfeksiyonları salgınının epidemiyolojik ve moleküler karakterizasyonu . J Clin Microbiol. 2004; 42 (10):4468–4472. doi: 10.1128/JCM.42.10.4468-4472.2004. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            2. Hajjeh RA, Sofair AN, Harrison LH, Lyon GM, Arthington-Skaggs BA, Mirza SA, et al. Candida türlerine bağlı kan dolaşımı enfeksiyonları insidansı ve 1998'den 2000'e kadar popülasyona dayalı aktif sürveyans programında toplanan izolatların in vitro duyarlılıkları. J Clin Microbiol. 2004; 42 (4):1519–1527. doi: 10.1128/JCM.42.4.1519-1527.2004. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            3. Ostrosky-Zeichner L, Rex JH, Pappas PG, Hamill RJ, Larsen RA, Horowitz HW, et al. Amerika Birleşik Devletleri'nde kan dolaşımındaki 2.000 Candida izolatının antifungal duyarlılık araştırması. Antimikrob Ajanlar Chemother. 2003; 47 (10):3149–3154. doi: 10.1128/AAC.47.10.3149-3154.2003. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            4. Oranlar FC, Kahverengi AJ, Gow NA. Antifungal ajanlar: etki mekanizmaları. Trendler Microbiol. 2003; 11 (6):272–279. doi: 10.1016/S0966-842X(03)00117-3. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            5. Johnson MD, MacDougall C, Ostrosky-Zeichner L, Perfect JR, Rex JH. Kombine antifungal tedavi. Antimikrob Ajanlar Chemother. 2004; 48 (3):693–715. doi: 10.1128/AAC.48.3.693-715.2004. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            6. Budzynska A, Sadowska B, Wieckowska-Szakiel M, Rozalska B. Candida albicans'ın seçilmiş bitki esansiyel yağlarının etkisi altında enzimatik profili, adeziv ve istilacı özellikleri . Açta Biochim Pol. 2014; 61 (1):115–121. [ PubMed ] [ Google Akademik ]
            7. Goñi P, López P. Tarçın ve karanfil esansiyel yağlarının bir kombinasyonunun buhar fazındaki antimikrobiyal aktivite. Gıda Kimyası 2009; 116 :982–989. doi: 10.1016/j.foodchem.2009.03.058. [ CrossRef ] [ Google Akademik ]
            8. Ahmad A, Khan A, Manzoor N. Akış aracılı antifungal direncin tersine çevrilmesi, iki monoterpenin flukonazol ile sinerjistik aktivitesinin temelini oluşturur. Eur J Pharm Sci. 2013; 48 (1–2):80–86. doi: 10.1016/j.ejps.2012.09.016. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            9. Bassole IH, Juliani HR. Uçucu yağlar kombinasyon halinde ve antimikrobiyal özellikleri. moleküller. 2012; 17 (4):3989–4006. doi: 10.3390/moleküller17043989. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            10. Cowan MM. Antimikrobiyal maddeler olarak bitki ürünleri. Clin Microbiol Rev. 1999; 12 (4):564–582. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            11. Giordani R, Regli P, Kaloustian J, Mikail C, Abou L, Portekiz H. Candida albicans'a karşı çeşitli uçucu yağların antifungal etkisi . Thymus vulgaris'ten elde edilen uçucu yağ ile amfoterisin B'nin antifungal etkisinin güçlendirilmesi . Fitoterapi Arş. 2004; 18 (12):990–995. doi: 10.1002/ptr.1594. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            12. Negri M, Salci TP, Shinobu-Mesquita CS, Capoci IR, Svidzinski TI, Kioshima ES. Antifungal doğal ürünler hakkında erken durum araştırması. moleküller. 2014; 19 (3):2925–2956. doi: 10.3390/moleküller19032925. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            13. Li Y, Nie Y, Zhou L, Li S, Tang X, Ding Y ve ark. Tarçın yağının Rhizopus nigricans'a karşı antifungal aktivitesinin olası mekanizması . J Chem Pharmaceut Arş. 2014; 6 (5):12–20. [ Google Akademik ]
            14. Lopez P, Sanchez C, Batlle R, Nerin C. Altı esansiyel yağın katı ve buhar fazlı antimikrobiyal aktiviteleri: seçilmiş gıda kaynaklı bakteri ve mantar suşlarının duyarlılığı. J Tarım Gıda Kimyası 2005; 53 (17):6939–6946. doi: 10.1021/jf050709v. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            15. Pires RH, Montanari LB, Martins CH, Zaia JE, Almeida AM, Matsumoto MT, et al. Tarçın yağının Candida parapsilosis ve Candida orthopsilosis'in planktonik ve biyofilm kültürlerine karşı antikandidal etkinliği . Mikopatoloji. 2011; 172 (6):453–464. doi: 10.1007/s11046-011-9448-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            16. Khan MS, Ahmad I, Cameotra SS. Fenil aldehit ve propanoidler, Candida albicans'ta ergosterol'ü hedef alan hücre zarına ve hücre duvarına yönelik çok sayıda etki alanı gösterir . AMB Ekspres. 2013; 3 (1):54. doi: 10.1186/2191-0855-3-54. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            17. Musthafa KS, Hmoteh J, Thamjarungwong B, Voravuthikunchai SP. Öjenil asetatın Candida türlerinin klinik izolatlarına karşı antifungal potansiyeli. Mikrob Patog. 2016; 99 :19–29. doi: 10.1016/j.micpath.2016.07.012. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            18. Shreaz S, Bhatia R, Khan N, Muralidhar S, Manzoor N, Khan LA. Sinnamik aldehitlerin Candida'nın H(+) ekstrüzyon aktivitesi ve ince yapısı üzerindeki etkileri. J Med Microbiol. 2013; 62 (Bölüm 2):232–240. doi: 10.1099/jmm.0.036145-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            19. Taguchi Y, Hasumi Y, Abe S, Nishiyama Y. Sinnamaldehitin Candida albicans'ın büyümesi ve morfolojisi üzerindeki etkisi . Med Mol Morpol. 2013; 46 (1):8–13. doi: 10.1007/s00795-012-0001-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            20. Zore GB, Thakre AD, Jadhav S, Karuppayil SM. Terpenoidler, membran bütünlüğünü ve hücre döngüsünün durmasını etkileyerek Candida albicans büyümesini engeller. Bitki ilacı. 2011; 18 (13):1181–1190. doi: 10.1016/j.phymed.2011.03.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            21. Wang GS, Deng JH, Ma YH, Shi M, Li B. Üç Candida türüne karşı tarçın yağı ve pogostemon yağı kompleksinin mekanizmaları, klinik olarak iyileştirici etkileri ve antifungal aktiviteleri. J Tradit Chin Med. 2012; 32 (1):19–24. doi: 10.1016/S0254-6272(12)60026-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            22. Bang KH, Lee DW, Park HM, Rhee YH. Mantar hücre duvarı sentezleyici enzimlerin trans-sinnamaldehit tarafından inhibisyonu. Biosci Biotechnol Biochem. 2000; 64 (5):1061–1063. doi: 10.1271/bbb.64.1061. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            23. Watanabe Y. Mayozda kinetokor ekinin tek taraflı görünümü. Hücre. 2006; 126 (6):1030–1032. doi: 10.1016/j.cell.2006.09.005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            24. Alsteens D, Beaussart A, El-Kirat-Chatel S, Sullan RM, Dufrene YF. Atomik kuvvet mikroskopisi: patojenlere yeni bir bakış. PLoS Hastalığı. 2013; 9 (9):e1003516. doi: 10.1371/journal.ppat.1003516. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            25. El-Kirat-Chatel S, Beaussart A, Alsteens D, Jackson DN, Lipke PN, Dufrene YF. Candida albicans'ta kaspofungin kaynaklı hücre yüzeyinin yeniden modellenmesinin nano ölçekli analizi . nano ölçek. 2013; 5 (3):1105–1115. doi: 10.1039/C2NR33215A. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            26. El-Kirat-Chatel S, Beaussart A, Alsteens D, Sarazin A, Jouault T, Dufrene YF. Patojenik ve patojenik olmayan maya hücrelerinin ana glikopolimerlerinin tek molekül analizi. nano ölçek. 2013; 5 (11):4855–4863. doi: 10.1039/c3nr00813d. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            27. Formosa C, Schiavone M, Martin-Yken H, Francois JM, Duval RE, Dague E. Caspofunginin iki maya türü olan Saccharomyces cerevisiae ve Candida albicans'a karşı nano ölçekli etkileri . Antimikrob Ajanlar Chemother. 2013; 57 (8):3498–3506. doi: 10.1128/AAC.00105-13. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            28. Formosa C, Schiavone M, Boisrame A, Richard ML, Duval RE, Dague E. Candida albicans'ın yüzeyindeki yapışkan nanoalanların atomik kuvvet mikroskobu ile multiparametrik görüntülenmesi. Nanotıp. 2015; 11 (1):57–65. doi: 10.1016/j.nano.2014.07.008. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            29. François JM, Formosa C, Schiavone M, Pillet F, Martin-Yken H, Dague E. Saccharomyces cerevisiae mayasında hücre duvarı özelliklerini ve strese tepkiyi keşfetmek için atomik kuvvet mikroskobunun (AFM) kullanımı . Kur Genet. 2013; 59 (4):187–196. doi: 10.1007/s00294-013-0411-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            30. Canetta E, Walker GM, Adya AK. Maya hücre yüzeylerinde oksidatif stresin neden olduğu nanoskopik morfolojik değişiklikler: atomik kuvvet mikroskobik bir çalışma. J Microbiol Biotechnol. 2009; 19 (6):547–555. [ PubMed ] [ Google Akademik ]
            31. Alsteens D, Aimanianda V, Hegde P, Pire S, Beau R, Bayry J, et al. Aspergillus fumigatus'un kitin sentaz mutantlarının nano ölçekli yüzey özelliklerinin ve bunların biyolojik etkilerinin çözülmesi. Biyofiz J. 2013; 105 (2):320–327. doi: 10.1016/j.bpj.2013.05.040. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            32. Adams RP. Uçucu yağ bileşenlerinin gaz kromatografisi/kütle spektroskopisi ile tanımlanması. Miami: Allured Publishing Corporation; 2007. [ Google Akademik ]
            33. Golmohammad F, Eikani MH, Maymandi HM. Tarçın kabuğu uçucu yağlarının katı faz ekstraksiyonu ve gaz kromatografisi kullanılarak ayrılması ve belirlenmesi. Procedia Müh. 2012; 42 :247–260. doi: 10.1016/j.proeng.2012.07.416. [ CrossRef ] [ Google Akademik ]
            34. Joulain D, König WA. Seskiterpen hidrokarbonların spektral verilerinin atlası. Hamburg: Verlag, EB; 1998. [ Google Akademik ]
            35. Sherwood RK, Bennett RJ. Candida albicans'ta normal mitotik bölünme ve morfogenez için mikrotübül motor proteini Kar3 gereklidir . Ökaryot Hücresi. 2008; 7 (9):1460–1474. doi: 10.1128/EC.00138-08. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            36. Endow SA, Kang SJ, Satterwhite LL, Rose MD, Skeen VP, Salmon ED. Maya Kar3, tercihen eksi uçlarda mikrotübülleri istikrarsızlaştıran bir eksi uçlu mikrotübül motor proteinidir. EMBO J.1994; 13 (11):2708–2713. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            37. Roemer T, Jiang B, Davison J, Ketela T, Veillette K, Breton A ve diğerleri. Candida albicans'ta büyük ölçekli esansiyel gen tanımlaması ve antifungal ilaç keşfi uygulamaları. Mol Mikrobiyoloji. 2003; 50 (1):167–181. doi: 10.1046/j.1365-2958.2003.03697.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            38. CaLS Enstitüsü. Antimikrobiyal duyarlılık testi için performans standartları: yirmi dördüncü bilgi eki M100-S24. Wayne, PA: CLSI; 2014. [ Google Akademik ]
            39. Rajput SB, Karuppayil SM. Küçük moleküller, Candida albicans'ta büyümeyi, canlılığı ve ergosterol biyosentezini inhibe eder . Springerplus. 2013; 2 (1):26. doi: 10.1186/2193-1801-2-26. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            40. Hsu CC, Lai WL, Chuang KC, Lee MH, Tsai YC. Linalool'ün Candida albicans'ta filamentli büyümeye ve biyofilm oluşumuna karşı inhibe edici aktivitesi . Med Mycol. 2013; 51 (5):473–482. doi: 10.3109/13693786.2012.743051. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            41. Dhamgaye S, Devaux F, Vandeputte P, Khandelwal NK, Sanglard D, Mukhopadhyay G, et al. Candida albicans'ta bitkisel antifungal alkaloid berberinin moleküler etki mekanizmaları . PLoS BİR. 2014; 9 (8):e104554. doi: 10.1371/journal.pone.0104554. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            42. Kumar A, Dhamgaye S, Maurya IK, Singh A, Sharma M, Prasad R. Curcumin, Candida albicans'ta kalsinörin aracılı sinyalleme yoluyla hücre duvarı bütünlüğünü hedefler . Antimikrob Ajanlar Chemother. 2014; 58 (1):167–175. doi: 10.1128/AAC.01385-13. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            43. Hammer KA, Carson CF, Riley TV. Melaleuca alternifolia (çay ağacı) yağı ve bileşenlerinin Candida albicans , Candida glabrata ve Saccharomyces cerevisiae üzerindeki antifungal etkileri . J Antimikrob Kemoterapi. 2004; 53 (6):1081–1085. doi: 10.1093/jac/dkh243. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            44. Li L, Aslam M, Haham F, Vanderwel MC, Ashton NW, Suh DY. Antik bir tip III poliketid sentaz olan PpORS, yaprak kütikülünün bütünlüğü ve yosun Physcomitrella patens'teki dehidrasyona karşı direnç için gereklidir . bitki 2017 [ PubMed ] [ Google Akademik ]
            45. Kwolek-Mirek M, Zadrag-Tecza R. Maya hücrelerinin canlılığını ve canlılığını değerlendirmek için kullanılan yöntemlerin karşılaştırılması. FEMS Maya Çöz. 2014; 14 (7):1068–1079. [ PubMed ] [ Google Akademik ]
            46. ​​Pinto E, Hrimpeng K, Lopes G, Vaz S, Goncalves MJ, Cavaleiro C, et al. Ferulago capillaris esansiyel yağının Candida, Cryptococcus, Aspergillus ve dermatofit türlerine karşı antifungal aktivitesi . Eur J Clin Microbiol Infect Dis. 2013; 32 (10):1311–1320. doi: 10.1007/s10096-013-1881-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            47. Bhat SV, Booth SC, McGrath SG, Dahms TE. Rhizobium leguminosarum bv. viciae 3841 "oksin benzeri" morfolojik değişiklikler, hücre zarfının yeniden şekillenmesi ve merkezi metabolik yolların yukarı regülasyonu ile 2,4-diklorofenoksiasetik aside uyum sağlar. PLoS BİR. 2014; 10 (4):e0123813. doi: 10.1371/journal.pone.0123813. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            48. Bhat SV, Booth SC, Vantomme EA, Afroj S, Yost CK, Dahms TE. 2,4-diklorofenoksiasetik asidin ölümcül olmayan seviyelerine maruz kalan Escherichia coli'de oksidatif stres ve metabolik bozulmalar . kimyasfer. 2015; 135 :453–461. doi: 10.1016/j.chemosphere.2014.12.035. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            49. Klis FM, de Koster CG, Brul S. Saccharomyces cerevisiae ve Candida albicans'ın hücre duvarı ile ilgili biyo sayıları ve biyo tahminleri . Ökaryot Hücresi. 2014; 13 (1):2–9. doi: 10.1128/EC.00250-13. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            50. Bapat P, Nandy SK, Wangikar P, Venkatesh KV. Metilen mavisi boya indirgeme testi (MBRT) kullanılarak metabolik olarak aktif biyokütle miktarının belirlenmesi: CFU'nun yaklaşık 200 saniyede ölçümü. J Mikrobiyoloji Yöntemleri. 2006; 65 (1):107–116. doi: 10.1016/j.mimet.2005.06.010. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            51. Resim K, Kirsop B. Metilen mavisi boyama kullanarak, bir maya popülasyonundaki yaşayabilir hücrelerin yüzdesini tahmin etmek için hızlı bir yöntem. Dünya J Microbiol Biotechnol. 1990; 6 (3):346–347. doi: 10.1007/BF01201311. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            52. Liu Y, Solis NV, Heilmann CJ, Phan QT, Mitchell AP, Klis FM, et al. Candida albicans'ın stres yanıtı, konakçı hücre etkileşimleri ve virülansında retrograd kaçakçılığın rolü . Ökaryot Hücresi. 2014; 13 (2):279–287. doi: 10.1128/EC.00295-13. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            53. Aguilar-Uscanga B, François JM. Büyüme koşullarına ve yetiştirme moduna yanıt olarak maya hücre duvarı bileşimi ve yapısı üzerine bir çalışma. Lett Appl Microbiol. 2003; 37 (3):268–274. doi: 10.1046/j.1472-765X.2003.01394.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            54. Chaffin WL. Candida albicans hücre duvarı proteinleri. Microbiol Mol Biol Rev. 2008; 72 (3):495–544. doi: 10.1128/MMBR.00032-07. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            55. Ücretsiz SJ. Mantar hücre duvarı organizasyonu ve biyosentezi. Av Genet. 2013; 81 :33–82. [ PubMed ] [ Google Akademik ]
            56. Fuchs BB, Mylonakis E. Yollarımız kesişebilir: mantar hücre duvarı bütünlük yolunun stres tepkisindeki rolü ve diğer stres tepkisi yollarıyla çapraz konuşma. Ökaryot Hücresi. 2009; 8 (11):1616–1625. doi: 10.1128/EC.00193-09. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            57. Heilmann CJ, Sorgo AG, Mohammadi S, Sosinska GJ, de Koster CG, Brul S, et al. Yüzey stresi, patojenik mantar Candida albicans'ta korunmuş bir hücre duvarı stres tepkisine neden olur . Ökaryot Hücresi. 2013; 12 (2):254–264. doi: 10.1128/EC.00278-12. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            58. Walker LA, Maccallum DM, Bertram G, Gow NA, Odds FC, Brown AJ. Memeli böbreğinin enfeksiyonu sırasında Candida albicans gen ekspresyon modellerinin genom çapında analizi . Fungal Genet Biol. 2009; 46 (2):210–219. doi: 10.1016/j.fgb.2008.10.012. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            59. Ene IV, Adya AK, Wehmeier S, Brand AC, MacCallum DM, Gow NA, et al. Konak karbon kaynakları, bir mantar patojeninde hücre duvarı mimarisini, ilaç direncini ve virülansı modüle eder. Hücre Mikrobiyolü. 2012; 14 (9):1319–1335. doi: 10.1111/j.1462-5822.2012.01813.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            60. Imtiaz T, Lee KK, Munro CA, Maccallum DM, Shankland GS, Johnson EM, et al. Kaspofungine kısa süreli maruz kalmanın ardından bir Candida albicans kan dolaşımı izolatında eş zamanlı FKS mutasyonu ve artan hücre duvarı kitine bağlı ekinokandin direnci . J Med Microbiol. 2012; 61 (Bölüm 9):1330–1334. doi: 10.1099/jmm.0.045047-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            61. Denning DW. Ekinokandin antifungal ilaçlar. Lancet. 2003; 362 (9390):1142–1151. doi: 10.1016/S0140-6736(03)14472-8. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            62. Walker LA, Munro CA, de Bruijn I, Lenardon MD, McKinnon A, Gow NA. Kitin sentezinin uyarılması Candida albicans'ı ekinokandinlerden kurtarır. PLoS Hastalığı. 2008; 4 (4):e1000040. doi: 10.1371/journal.ppat.1000040. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            63. Lee KK, Maccallum DM, Jacobsen MD, Walker LA, Odds FC, Gow NA, et al. Candida albicans'taki yükseltilmiş hücre duvarı kitini, in vivo olarak ekinokandin direnci sağlar. Antimikrob Ajanlar Chemother. 2012; 56 (1):208–217. doi: 10.1128/AAC.00683-11. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            64. Cota JM, Grabinski JL, Talbert RL, Burgess DS, Rogers PD, Edlind TD, et al. SLT2 ekspresyonundaki ve kitin içeriğindeki artışlar, Candida glabrata'nın kaspofungin tarafından eksik öldürülmesiyle ilişkilidir . Antimikrob Ajanlar Chemother. 2008; 52 (3):1144–1146. doi: 10.1128/AAC.01542-07. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            65. Fortwendel JR, Juvvadi PR, Pinchai N, Perfect BZ, Alspaugh JA, Perfect JR, et al. Aspergillus fumigatus'un ras ve kalsinörin mutantlarında kitin ve 1,3-{beta}-d- glukan sentezini inhibe etmenin farklı etkileri . Antimikrob Ajanlar Chemother. 2009; 53 (2):476–482. doi: 10.1128/AAC.01154-08. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            66. Pfaller M, Riley J. Flukonazolün dört Candida türünün sterol ve karbonhidrat bileşimi üzerindeki etkileri. Eur J Clin Microbiol Infect Dis. 1992; 11 (2):152–156. doi: 10.1007/BF01967067. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            67. Popolo L, Gualtieri T, Ragni E. Maya hücre duvarı kurtarma yolu. Med Mycol. 2001; 39 (Ek 1):111–121. doi: 10.1080/mmy.39.1.111.121. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            68. Walker LA, Gow NA, Munro CA. Yüksek kitin içeriği, Candida türlerinin kaspofungine duyarlılığını azaltır. Antimikrob Ajanlar Chemother. 2013; 57 (1):146–154. doi: 10.1128/AAC.01486-12. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            69. El-Kirat-Chatel S, Mil-Homens D, Beaussart A, Fialho AM, Dufrene YF. Tek moleküllü atomik kuvvet mikroskobu, bir Burkholderia cenocepacia trimerik ototransporter adezinin bağlanma mekanizmasını çözer . Mol Mikrobiyoloji. 2013; 89 (4):649–659. doi: 10.1111/mmi.12301. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            70. Lesage G, Bussey H. Saccharomyces cerevisiae'de hücre duvarı düzeneği . Microbiol Mol Biol Rev. 2006; 70 (2):317–343. doi: 10.1128/MMBR.00038-05. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            71. Paul BC, El-Ganiny AM, Abbas M, Kaminskyj SG, Dahms TE. Aspergillus nidulans hifal duvar yüzeyi organizasyonunda galaktofuranozun öneminin atomik kuvvet mikroskobu ile ölçülmesi. Ökaryot Hücresi. 2011; 10 (5):646–653. doi: 10.1128/EC.00304-10. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            72. Hoyer LL. Candida albicans'ın ALS gen ailesi . Trendler Microbiol. 2001; 9 :176–180. doi: 10.1016/S0966-842X(01)01984-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            73. Lipke PN, Garcia MC, Alsteens D, Ramsook CB, Klotz SA, Dufrene YF. İlişkilerin güçlendirilmesi: amiloidler, mayalarda yapışma nanoalanları oluşturur. Trendler Microbiol. 2012; 20 (2):59–65. doi: 10.1016/j.tim.2011.10.002. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            74. Glee PM, Cutler JE, Benson EE, Bargatze RF, Hazen KC. Fizyolojik kayma akışı sırasında hidrofobik protein aracılı Candida albicans'ın endotel hücrelerine bağlanmasının inhibisyonu . Bağışıklık bulaştırın. 2001; 69 (5):2815–2820. doi: 10.1128/IAI.69.5.2815-2820.2001. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            75. Ruiz-Herrera J, Elorza MV, Valentin E, Sentandreu R. Candida albicans'ın hücre duvarının moleküler organizasyonu ve bunun patojenite ile ilişkisi. FEMS Maya Çöz. 2006; 6 (1):14–29. doi: 10.1111/j.1567-1364.2005.00017.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            76. Lopez-Ribot JL, Casanova M, Martinez JP, Sentandreu R. Candida albicans'ın maya ve hidrofobik misel hücrelerinin hücre duvarı proteinlerinin karakterizasyonu . Bağışıklık bulaştırın. 1991; 59 (7):2324–2332. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            77. Roncero C, Duran A. Kalkoflor beyazı ve Kongo kırmızısının mantar hücre duvarı morfojenezi üzerindeki etkisi: kitin polimerizasyonunun in vivo aktivasyonu. J Bakteriol. 1985; 163 (3):1180–1185. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            78. Kopecka M, Gabriel M. Kongo kırmızısının Saccharomyces cerevisiae'de hücre duvarı ve (1-3)-beta -d -glukan mikrofibril biyogenezi üzerindeki etkisi . Arch Microbiol. 1992; 158 (2):115–126. doi: 10.1007/BF00245214. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            79. Ani PE. Candida albicans hiflerinin büyümesi . Nat Rev Mikro. 2011;9(10):737–48. http://www.nature.com/nrmicro/journa...ro2636_S1.html . [ PubMed ]
            80. Wightman R, Bates S, Amornrrattanapan P, Sudbery P. Candida albicans'ta Nim1 kinazları Gin4 ve Hsl1, psödohifa oluşumunu negatif olarak düzenler ve Gin4 ayrıca septin organizasyonunu da kontrol eder. J Hücre Biol. 2004; 164 (4):581–591. doi: 10.1083/jcb.200307176. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            81. Bachewich C, Thomas DY, Whiteway M. Candida albicans'ta polo benzeri bir kinazın tükenmesi, siklaz bağımlı hif benzeri büyümeyi aktive eder. Mol Biol Hücresi. 2003; 14 (5):2163–2180. doi: 10.1091/mbc.02-05-0076. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            82. Jacobs CW, Adams AE, Szaniszlo PJ, Pringle JR. Saccharomyces cerevisiae hücre döngüsündeki mikrotübüllerin işlevleri . J Hücre Biol. 1988; 107 (4):1409–1426. doi: 10.1083/jcb.107.4.1409. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            83. Mardon D, Balish E, Phillips AW. Candida albicans'ın biyokimyasal bir varyantında dimorfizmin kontrolü . J Bakteriol. 1969; 100 :701–707. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            84. Huffaker TC, Thomas JH, Botstein D. Beta-tubulin mutasyonlarının mikrotübül oluşumu ve işlevi üzerindeki çeşitli etkileri. J Hücre Biol. 1988; 106 (6):1997–2010. doi: 10.1083/jcb.106.6.1997. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            85. Xu D, Jiang B, Ketela T, Lemieux S, Veillette K, Martel N, et al. Candida albicans'taki inhibitör bileşiklerin genom çapında uygunluk testi ve etki mekanizması çalışmaları . PLoS Hastalığı. 2007; 3 (6):e92. doi: 10.1371/journal.ppat.0030092. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            86. Finley KR, Berman J. Candida albicans hyphae'deki mikrotübüller nükleer dinamikleri yönlendirir ve hücre döngüsü ilerlemesini morfojeneze bağlar. Ökaryot Hücresi. 2005; 4 (10):1697–1711. doi: 10.1128/EC.4.10.1697-1711.2005. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            87. Berman J. Candida albicans'ta morfogenez ve hücre döngüsü ilerlemesi . Curr Opin Microbiol. 2006; 9 (6):595–601. doi: 10.1016/j.mib.2006.10.007. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            88. Correia I, Alonso-Monge R, Pla J. Saccharomyces cerevisiae ve Candida albicans'ta MAPK hücre döngüsü düzenlemesi . Geleceğin Mikrobiyolu. 2010; 5 (7):1125–1141. doi: 10.2217/fmb.10.72. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            89. Correia IS. editoryal. Mayalarda ilaçlara ve diğer kimyasal streslere tepki. OMİK. 2010; 14 (6):615–617. doi: 10.1089/omi.2010.00ed. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            90. Brennan TC, Turner CD, Kromer JO, Nielsen LK. Saccharomyces cerevisiae'de jet yakıtı karışımlarının biyo-üretimi için iki fazlı bir ekstraktif fermantasyon kullanarak monoterpen toksisitesinin hafifletilmesi . Biyoteknoloji Biyomüh. 2012; 109 (10):2513–2522. doi: 10.1002/bit.24536. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            91. Miron D, Battisti F, Silva FK, Lana AD, Pippi B, Casanova B, et al. Antifungal aktivite ve monoterpenlerin dermatofitlere ve mayalara karşı etki mekanizması. Revista Brasileira de Farmacognosia. 2014; 24 (6):660–667. doi: 10.1016/j.bjp.2014.10.014. [ CrossRef ] [ Google Akademik ]
            92. Pina-Vaz C, Goncalves Rodrigues A, Pinto E, Costa-de-Oliveira S, Tavares C, Salgueiro L, et al. Timus yağlarının ve bunların ana bileşiklerinin antifungal aktivitesi. J Eur Acad Dermatol Venereol JEADV. 2004; 18 (1):73–78. doi: 10.1111/j.1468-3083.2004.00886.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            93. Hwang E, Kusch J, Barral Y, Huffaker TC. Saccharomyces cerevisiae'deki iğ oryantasyonu, mikrotübül uçlarının polarize aktin kabloları boyunca taşınmasına bağlıdır. J Hücre Biol. 2003; 161 (3):483–488. doi: 10.1083/jcb.200302030. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

            Yorum yap

            Hazırlanıyor...
            X