
Duyuru

Collapse
No announcement yet.

Susam Yağı

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Susam Yağı

    SUSAM


    Bir Yıllık | 0,3-1,5m | 6-9 Aylar | Tohumu ve Yapı

    Susam, Sesam, Sesamum orientale
    Şırlagan Syn: Sesamum indicum
    Şirik
    Şırlan

    Familyası: Susamgillerden, Pedaliengewaechse, Pedaliaceae

    Drugları: Susam tohumu: Sesami semen
    Susam yağı: Sesami oleum
    Susam tohumu ekmek yapımında ve yağ elde etmek için, susam yağı ise ilaç yapımında ve yemeklerde kullanılır.

    Giriş: Susamın bilinen takriben 20 alttürü mevcuttur ve bunlar genellikle aynı türden türemiştir. Susamın nerede ne zaman kültür bitkisi olarak Babil, Mezopotamya, Mısır, Hindistan veya Sümerler (Çivi Yazısını ilk icat eden ve tarımda sulama kanalarını ilk kuran ilk Medeniyet kurucuları Eski Türkler ve Sümerlerde bu medeniyeti Orta Doğuya Orta Asyadaki insanalık tarihin en eski medeniyeti olan Türk-ANUA medeniyetinden alıp getirmişleridir. Bazı tarihçilerde Türklerin Orta Asya'dan gelmediği Orta Asyaya Anadoludan gittiği yönündedir. Çatalhöyük'deki bulgular bunu göstermektedir.) tarafından ilk defa yetiştirildiği yolunda değişik görüşler mevcuttur. Bu nedenle bazı botanik uzmanları yakın doğudan geldiğini, bazıları ise Hindistan olduğu yönünde beyanlarda bulunmaktadırlar. Eski Kavimler tarafından hafif yanıklara karşı kullanılmıştır.

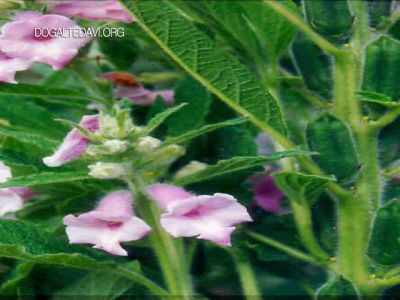
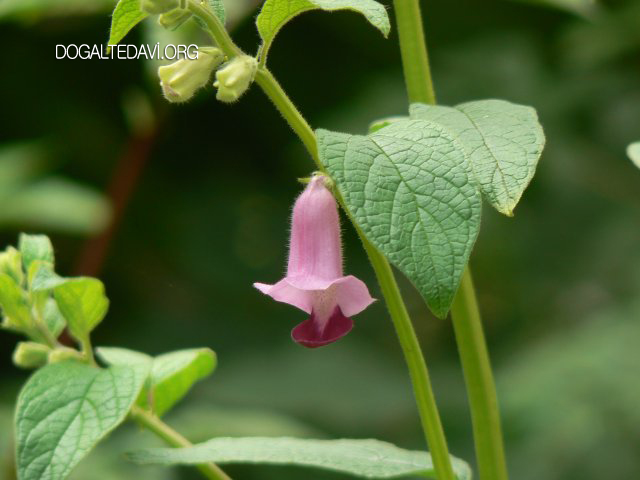
    Botanik: Susam 30-150cm boyunda bir yıllık dikine yükselen, çok nadiren çatallaşan bitki dört veya altı köşeli ve üzeri tüylüdür. Yaprakları 5-10cm uzunluğunda 2-10cm eninde yumurta veya mızrak şeklinde uçlara doğru sivrice kenarları düz veya kertikli, değişken veya karşılıklı dizilmiş olabilir ve üzeri tüylüdür. Çiçekleri beyazımsı, pembe renkte tacının gerisi koni şeklinde ucu beş loplu ve üzeri tüylüdür. Çiçekleri gövdenin tepesinde topluca bir arada ve her çiçeği yaprak saplarının dibinden çıkar. Meyveleri kapsül şeklinde, kapsülleri 2-3cm uzunluğunda 0,5- 1 cm eninde ve genellikle 3mm uzunluğunda esmer, kırmızımsı sarımsı veya siyah renkte olabilir ve bir kapsülde 70-90 tohum bulunur.

    Yetiştirilmesi: Vatanı muhtemelen Hindistan olduğu zannedilen bitki gü-nümüzde tropik ve subtropik iklimde rahatlıkla yetiştirilmektedir ve Türkiye'de de bolca yetiştirilmektedir.

    Hasat zamanı: Olgunlaşan kapsülleri toplanarak dövülür ve içindeki to-humları çıkarılır.

    Birleşimi: Yağının birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) Liganları 1) Bisepoksiliganlar (%0,7-1,5) ve 2) Liganglikozitler %0,8-1,2) oluşur. Bisepoksiliganlar %30-50 Sesamolin, Asarin'in, Sesamolinol ve Simplexosidanglykon en önemlileridir. Liganglikozitler; Pinoresinol-4-0-β-D-glucopyronozyl (1-6)-β-D-glikopyranosid ve Pinoresinol-4-O-β-D-glikopyronosyl (1-2)-β-D-glikopyranosid
    b) Doymamış ve doymuş yağ asitleri %45-63 arasında olup bunun da %42-48 Linolasit, %36-42 Oleikasit, %5-10 Palmitinasit, %3-10 Stearinasit ve az miktarda Arachinasit ve Myristinasit içerir.
    c) Steroller; β-Sitosterol, Campesterol ve Stigmasterol
    Tohumlarında yağlarındaki maddelerin haricinde Karbonikasitler, Fenoller ve Flavonitler içerir.

    Tesir şekli: Hafif müshil yapıcı, hafif iltihapları önleyici, hafif şişmanlatıcı ve İmmün sistemi kuvvetlendiricidir.

    Kullanılması:
    a) Üniversite kliniklerinde tedavi denemeleri ve araştırmalar yapılmıştır. Bu nedenle bugünkü bilgilere göre Başta Candida Mantarı yüksek tansiyon, kan basıncı gibi rahatsızlıklara karşı kullanılır.
    b) Susam yağı hafif müshil yapıcı, hafif iltihapları önleyici, hafif şişman-latıcı ve hafif immün sistemini kuvvetlendiricidir. Türkiye'de genellikle yemek yağı ve tahin yapımında kullanılır. Japonlar 2-3ayda bir susam yağını baştan ayak tırnaklarına kadar sürerek ovalarlar ve 20-30 dakika bekledikten sonra banyo yaparlar. Bu yağın vücutlarını temiz-lediğine inanırlar.

    Yan tesirleri: Bilinen bir yan tesiri yoktur.

  • #2
    Tahin tüketimi sağlıklı erkeklerde kan basıncını ve endotel fonksiyonunu etkiler

    Eleni-Konstantina I Sakketou 1, Georgios K Baxevanis 1, Nikolaos K Tentolouris 2, George D. Konstantonis 2, Vaios T Karathanos 3, Georgios A Fragkiadakis 1, Panagiotis T Kanellos 4 5
    üyelikler yıkılmak üyelikler

    • 1Diyetetik ve İnsan Vücudu Bileşimi Laboratuvarı, Beslenme ve Diyetetik Bilimleri Bölümü, Sağlık Bilimleri Fakültesi, Yunan Akdeniz Üniversitesi, Siteia, Yunanistan.
    • 2Diyabet Merkezi, Birinci Propaedeutik Dahiliye Bölümü, Tıp Fakültesi, Atina Ulusal ve Kapodistrian Üniversitesi, Laiko Genel Hastanesi, Atina, Yunanistan.
    • 3Beslenme ve Diyetetik Bölümü, Sağlık Bilimleri ve Eğitim Fakültesi, Harokopio Üniversitesi, Kallithea, Atina, Yunanistan.
    • 4Diyetetik ve İnsan Vücudu Bileşimi Laboratuvarı, Beslenme ve Diyetetik Bilimleri Bölümü, Sağlık Bilimleri Fakültesi, Yunan Akdeniz Üniversitesi, Siteia, Yunanistan. pkanell@hua.gr.
    • 5Beslenme ve Diyetetik Bölümü, Sağlık Bilimleri ve Eğitim Fakültesi, Harokopio Üniversitesi, Kallithea, Atina, Yunanistan. pkanell@hua.gr.
    Soyut

    Susam (Sesamum indicum L.) çoklu doymamış yağ asitleri, proteinler, E vitamini ve lignanlar açısından zengindir. Son araştırmalar, susam tohumlarının ve susam yağının antioksidan, antihipertansif, hipolipidemik ve iştah kontrol edici özelliklerini vurgulamıştır. Ancak tahin (susam ezmesi) tüketiminin insan sağlığına etkisi konusunda literatürde bir boşluk bulunmaktadır. Bu nedenle amaç, tahin tüketiminin kan basıncı, endotel fonksiyonu ve arter sertliği üzerindeki tokluk etkisini araştırmaktır. Ortalama yaşı 28 olan ve ortalama BMI 25.81 kg/m 2 olan 20 sağlıklı erkekdahil edildi. 12 saatlik bir açlığın ardından, başlangıçtaki kan toplandı, katılımcılar 50 g tahin tüketti ve yemekten 4 saat sonra kan alımı tekrarlandı. Kan basıncının, nabız hızının, hemodinamik parametrelerin ve endotel fonksiyonunun değerlendirilmesi, çalışmanın başlangıcında ve sonunda yapıldı. Başlangıçta ve yemekten 4 saat sonra hücreler arası hücre yapışma molekülü-1, vasküler hücre yapışma molekülü-1 ve E-selektin seviyelerinin miktarının belirlenmesi için kan numuneleri kullanıldı. Tahin tüketiminden 4 saat sonra diyastolik kan basıncında (p = 0.010) ve nabız sayısında (p = 0.002) istatistiksel olarak anlamlı bir düşüş gözlendi. Yemekten 4 saat sonra serum trigliseritlerinde (p < 0.001) ve akış aracılı dilatasyonda önemli artışlar (p = 0.022) gözlendi. Müdahalenin sonunda ölçülen diğer endekslerde başlangıca göre herhangi bir değişiklik gözlenmedi. Bu, tahin tüketiminin kan basıncını ve nabız hızını düşürebileceğini ve endotel fonksiyonunu iyileştirebileceğini bildiren ilk çalışmadır ve daha az arzu edilen bir lipit profiline sahip diğerlerinin yerine sağlıklı bir atıştırmalık önermektedir.

    © 2021. Yazar(lar), Springer Nature Limited'in münhasır lisansı altındadır.

    Yorum yap


    • #3
      Susam tohumlarının ve susam ürünlerinin tüketiminin kan şekeri seviyeleri üzerinde olumlu etkileri var, ancak insülin direnci üzerinde değil: Kontrollü klinik çalışmaların sistematik bir incelemesi ve meta-analizi

      Muhammed Hasan Sohouli 1, Niloufar Haghshenas 2, Angela Hernández-Ruiz 3, Farzad Shidfar 2
      üyelikler yıkılmak üyelikler

      • 1Öğrenci Araştırma Komitesi, Klinik Beslenme ve Diyetetik Bölümü, Beslenme ve Gıda Teknolojisi Fakültesi, Shahid Beheshti Tıp Bilimleri Üniversitesi, Tahran, İran.
      • 2Beslenme Bölümü, Halk Sağlığı Okulu, İran Tıp Bilimleri Üniversitesi, Tahran, İran.
      • 3Iberoamerican Nutrition Foundation (FINUT), Armilla, İspanya.
      Soyut

      Yağ, lignanlar ve proteinler içeren yağlı bir tohuma sahip susam, antioksidan, antiobezite ve antiinflamatuar etkiler gibi sağlık yararları gösteren popüler bir bitkidir. Bu sistematik inceleme ve meta-analizde, susam tohumlarının ve tüketiminin bir kontrol grubuyla karşılaştırıldığında yetişkin insanlarda kan şekeri ve insülin direnci üzerindeki etkisini özetlemeyi amaçladık. PubMed/MEDLINE, SCOPUS, Web of Science, Google Scholar ve EMBASE, Şubat 2021'e kadar uygun kontrollü klinik deneyleri belirlemek için arandı. Son olarak, bu çalışmaya sekiz klinik deney dahil edildi. Bu denemelerde kullanılan susam ürünleri susam yağı, sesamin ve tahin olup, müdahale süresi 45 gün ile 9 hafta arasında değişmiştir. Sonuçlarımız, susam ve ürünlerinin açlık kan şekeri FBG (ağırlıklı ortalama fark, WMD: -21.31 mg/dl, %95 CI: -41.23, -1.39, p = .036) ve HbA1c (WMD: -0.75, %95 CI: -1.16, -0.34, p < .001) seviyeleri üzerinde anlamlı pozitif etkilerini gösterdi, ancak sonuçlar açlık serum insülini ( KİS: 5,51 μU/ml, %95 GA: -2,31, 13,33, p = ,167) ve HOMA-IR (KİS: -0,07, %95 GA: -0,33, 0,20, p = ,617) anlamlı değildi. Susam, insan glukoz metabolizması için yararlı bir ajan olarak kabul edilebilir ve glukoz düşürücü diyetlerin bir parçası olabilir.

      Anahtar Kelimeler: açlık glikozu; açlık insülini; insülin direnci; meta-analiz; susam.

      Yorum yap


      • #4
        Entegre bir Silico ve Biyolojik Tarama Platformu Kullanılarak Sesamum indicum'dan Sesamin'in Güçlü Bir Antifungal Ajan Olarak Tanımlanması

        Khushbu Wadhwa , Metodoloji , Doğrulama , Biçimsel analiz , Araştırma , Veri kürasyonu , Yazma - gözden geçirme ve düzenleme , 1 Hardeep Kaur , Metodoloji , Doğrulama , Biçimsel analiz , Araştırma , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , 1 Neha Kapoor , Kavramsallaştırma , Metodoloji , Yazılım , Doğrulama , Biçimsel analiz, Soruşturma , Veri iyileştirme , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , Denetim , 2, * ve Simone Brogi , Kavramsallaştırma , Metodoloji , Yazılım , Doğrulama , Biçimsel analiz , İnceleme , Veri iyileştirme , Yazma - orijinal taslak , Yazma - gözden geçirme ve düzenleme , Denetim 3, *
        Francisco Torrens, Akademik Editör
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
        1 Fungal Biyoloji Laboratuvarı, Ramjas College, Delhi Üniversitesi, Delhi 110007, Hindistan
        2 Kimya Bölümü, Hindu Koleji, Delhi Üniversitesi, Delhi 110007, Hindistan
        3 Eczacılık Bölümü, Pisa Üniversitesi, Via Bonanno 6, 56126 Pisa, İtalya
        * Yazışma: ni.ca.ud.udnih@roopakahen (NK); ti.ipinu@igorb.enomis (SB); Tel.: +91-011-27667184 (NK); +39-050-2219613 (SB) İlişkili Veriler

        Tamamlayıcı Malzemeler Veri Kullanılabilirliği Bildirimi
        Git: Soyut


        Antifungal ilaçların sınırlı mevcudiyeti ve ilgili yan etkileri nedeniyle ve ilaca dirençli suşların isyanı göz önüne alındığında, yeni antifungal ajanlara acilen ihtiyaç duyulmaktadır. Bu tür etkenleri belirlemek için entegre bir hesaplamalı ve biyolojik tarama platformu geliştirdik. Antifungal ilaç keşfinde umut verici bir ilaç hedefi olarak değerlendirdik ( ekzo-1,3-β-glukanaz) ve biyoaktif doğal ürünlerden oluşan bir fitokimyasal kütüphane kullanılmıştır. Bu ürünler, ilaç benzeri profilin değerlendirilmesiyle birlikte moleküler yerleştirme ve moleküler dinamik teknikleri kullanılarak seçilen hedefe karşı hesaplamalı olarak tarandı. Potansiyel bir antifungal profil ve tatmin edici ilaç benzeri özelliklere sahip en umut verici fitokimyasal olarak sesamini seçtik. Sesamin , MIC/MFC'yi hesaplayarak ve pazarlanan ilaç flukonazol ile sinerjistik deneyler yaparak birkaç Candida türünün büyümesini engelleme kabiliyetini test etmek için bir ön biyolojik değerlendirmeye tabi tutuldu . Tarama protokolünün ardından, sesamin'i potansiyel bir ekzo olarak belirledik.-1,3-β-glukanaz inhibitörü, Candida türlerinin büyümesini doza bağımlı bir şekilde inhibe etme potansiyeline sahip (sırasıyla MIC ve MFC 16 ve 32 µg/mL). Ayrıca, sesaminin flukonazol ile kombinasyonu, ilgili sinerjistik etkileri vurguladı. Açıklanan tarama protokolü, mantar enfeksiyonlarına karşı yenilikçi terapötiklerin geliştirilmesine giden yolu açan, ilginç bir tahmin edilen farmakolojik profil gösteren, potansiyel yeni bir antifungal ajan olarak doğal ürün sesamin'i ortaya çıkardı. Özellikle, tarama protokolümüz antifungal ilaç keşfinde yardımcı olabilir.

        Anahtar Kelimeler: sanal tarama, bilgisayar destekli ilaç keşfi, antifungal ajanlar, Candida türleri, ekzo -1,3-β-glukanaz, sinerjizm
        Git: 1. Giriş


        Candida , diyabet, kanser, AIDS, organ nakli ve diğer bağışıklık sistemini baskılayan durumlardan muzdarip bağışıklığı baskılanmış hastalarda dünya çapında önemli miktarda ölüme neden olan fırsatçı bir mantar patojenidir. Candida , hem yüzeysel hem de sistemik enfeksiyonlarda yer alan en baskın mantar patojenidir ve hastanede yatan hastalarda en sık izole edilen üçüncü kan dolaşımı patojenidir [ 1 ]. Candida albicans ve C. glabrata , C. parapsilosis , C. tropicalis ve C. krusei gibi gelişmekte olan albicans dışı Candida (NAC) türlerioral ve vajinal mukozanın yüzeysel enfeksiyonlarının yanı sıra yayılmış kan dolaşımı ve derin doku enfeksiyonlarına neden olabilir [ 2 ]. Azoller ve polienler gibi antifungal ajanlar konakçıda ciddi yan etkiler ve toksisite sergiler; bu nedenle, yeni antifungal ajanları keşfetmeye acil bir ihtiyaç vardır. Şu anda, mantar enfeksiyonlarının tedavisi için sınırlı antifungal ilaçlar mevcuttur ve ilaca dirençli suşların ortaya çıkışı artmaktadır [ 3 ]. Antifungal ilaç keşfinde ümit verici bir ilaç hedefi, ekzo -1,3-β-glukanaz [ 4 ] tarafından temsil edilmektedir . Bu enzim, Candida spp.'nin hücre duvarının yeniden şekillenmesinde yer alır . [ 5 ]. Candida'nın hücre duvarıspp. doğada oldukça dinamiktir ve hücrenin en dış tabakasını oluşturur. Hücrenin şeklini ve bütünlüğünü korumaya yardımcı olur ve konakçı hücrelerle çeşitli etkileşimler oluşturur [ 6 ]. Candida türlerinin hücre duvarı . esas olarak dış fibriler tabakayı oluşturan polisakkaritler, glukan, kitin ve mannandan oluşur. Hücre duvarının merkezi çekirdeği, kitin ve galaktomannan'ın kovalent olarak bağlandığı β-1,6 dal noktalarına sahip dallı bir glukan olan bir β-1,3-glukan polimerinden oluşur. Mannanlar genellikle proteinler ve lipidlerle ilişkilidir ve toplam hücre duvarı polisakkaritlerinin %30-35'ini temsil eder [ 7 , 8].]. Hücre duvarı montajı sırasındaki hücre duvarı proteini işlevi, konakçı hücreye yeniden şekillenme ve yapışma, abiyotik yüzey, biyofilm oluşumu, epitel dokularının istilası için çok önemlidir ve ayrıca konakçı bağışıklık sistemlerinin mekanizmasından kaçmada çok önemlidir. Buna ek olarak, hücre duvarı, genellikle hücre duvarının yeniden modellenmesinde yer alan kitinazlar, glukanazlar, peptidazlar ve glikosiltransferazlar dahil olmak üzere çeşitli enzimler içerir, böylece hücre büyümesi veya oksidatif strese yanıt olarak lizis sırasında esneklik ve mekanik güç sağlar [8 ] . β-1,3-glukan ve β-1,6-glukan, hücre duvarının ana bileşenleridir ve toplam bileşenin sırasıyla %40 ve %20'sini oluşturur. β-1,3-glukan hidrolize edici enzimler, ekzo -1,3-β-glukanazlar gibi iki tipte sınıflandırılır veendo -1,3-β-glukanazlar. endo -1,3-β-Glukanaz, küçük oligosakkaritleri serbest bırakmak için bir glukan zinciri içinde bölünürken, ekzo -1,3-β-glukanaz, tek bir ürün olarak indirgeyici olmayan uçtan glikoz monomerlerini serbest bırakır [ 5 ]. C. albicans'ta , üç ilişkili ekzo -1,3-β-glukanaz, yani Xog1p, Exg2p ve Spr1p, glikozu hücre duvarı glukanlarının uçlarından hidrolitik olarak uzaklaştırır [ 9 , 10 ]. C. albicans Spr1p'nin mekanizması tam olarak anlaşılamamıştır, ancak özellikle Saccharomyces cerevisiae'de sporlanma sırasında eksprese edilmektedir [ 11 ]. Exg2p, C. albicans sırasında mevcutturhücre duvarı rejenerasyonu. Xog1p, C. albicans periplazmik hücre duvarı ile ilişkili başlıca ekzo -1,3-β-glukanazdır . Molekül kütlesi ~45 kDa [ 12 ] olan glikosile edilmemiş bir proteindir . Uzun β-1,3 glukan zincirlerinin bölünmesi, hücre duvarının yumuşamasına neden olur. Bu enzim , konidyumların şişmesi ve çimlenmesi veya hiflerin dallanması sırasında ortaya çıkan Candida'nın hücre duvarı yeniden modellenmesinde yer alır [ 13 ]. Protein, hidrolaz ve transglikosidaz aktiviteleri yoluyla β-D-glukan metabolizması ve morfogenezde yer alır [ 14 ]. Bu enzimin sesamin ile hedeflenmesi, Candida'nın morfogenetik geçişini engelleyebilir.spp. öldürücü olmayan mayadan öldürücü hif formuna [ 14 , 15 ]. Hücre duvarı bileşenlerinin yapısal karmaşıklığı, Candida türlerinin fizyolojisini sürdürmek için gereklidir . Yazarların , farklı konsantrasyonlarda susam yağının misel ve maya formları üzerindeki etkisini belirleyerek yenilebilir susam yağının Candida albicans'a karşı antifungal aktivitesini bildirdiği bir çalışma yapılmıştır [ 15 ].]. Hücre duvarının işlevini ve bütünlüğünü hedeflemek, hücre yapışması gibi enfeksiyon süreçlerinin gelişimini kısıtlamak için umut verici bir yaklaşım olarak kabul edilir. Doğal ürünler, düşük toksisite ve yan etkileri, düşük ilaç direnci, yüksek biyoyararlanım (oral alım) ve daha iyi iyileştirici etkileri nedeniyle ilaçların geliştirilmesi için önemli tıbbi adaylar olarak kabul edilir [16 ] .

        Buna göre, bu çalışmada yenilikçi antifungal bileşikleri belirlemek için fitokimyasalların farklı Candida türlerine karşı taranmasını birleştirdik . Moleküler yerleştirme ve moleküler dinamik (MD) simülasyon tekniklerini kullanarak, sesamin'i ekzo -1,3-β-glukanaz ile potansiyel olarak etkileşime girebilen umut verici bir bileşik olarak tanımladık . Sesamin, bir antikanser, antienflamatuar, antiviral, antioksidan ve antimikrobiyal ajan olarak muazzam bir terapötik potansiyele sahiptir [ 17 , 18 , 19 ]. susam indicumL. (Pedaliaceae) (susam) dünyanın en önemli mahsullerinden biridir. Susam yağı, büyük miktarlarda çoklu doymamış yağ asitleri, proteinler, karbonhidratlar, sesamin, sesamolin, sesamol, tokoferol, fitosteroller, vitaminler ve mineraller içerir [ 20 , 21 ]. Önceki çalışmalar, doğal ürün sesamol'ü farklı Candida türlerine karşı araştırmıştır . kalsinörin sinyal yolu üzerindeki etkisini bildirerek [ 22 ]. Bazı araştırmacılar ayrıca susam yağı kekinden sentezlenen gümüş nanopartiküllerin antikanser ve antimikrobiyal aktivitelerde kullanıldığını bildirmiştir [ 23 ]. Sesamin'in yalnızca C. albicans'a karşı antifungal aktivitesine dair bir rapor vardı.MİK değerinin çok yüksek olduğu bildirilmiş olsa da [ 24 ].

        Bu çalışma, hesaplama tekniklerini ve biyolojik deneyleri birleştirerek, sesamin'in birkaç Candida suşuna karşı bir antifungal ajan olarak bir ön değerlendirmesini sağlamıştır. Tarama iş akışı şurada rapor edilir:Şekil 1.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g001.jpg'dir.

        Şekil 1
        Yeni antifungal ajanları belirlemek için tarama iş akışı.

        Git: 2. Sonuçlar ve Tartışma

        2.1. Hesaplamalı Ayrıntılar


        Uygun ilaç benzeri profillere ( Tablo S1 ) sahip 40 fitokimyasal içeren kitaplığın hazırlanmasından sonra , bileşiklerin ekzo -1,3-p-glukanaz bağlayıcılar gibi davranıp davranmadığını belirlemek için sanal bir ligand taraması gerçekleştirdik . Candida spp.'den ekzo -1,3 - β-glukanaz (Exg) . 438 amino asitlik bir preproenzimi kodlayan EXG geninin ürünüdür [ 25 ]. Olgun protein 400 amino asit içerir ve β-1,3-glukanın indirgeyici olmayan ucundan bir glikoz kalıntısının ve çok daha az ölçüde β-1,6-glukanın hidrolitik olarak uzaklaştırılmasıyla mantarların hücre duvarı β-glukanının metabolizmasında yer alır [ 12]. Glukanlar, genellikle sertlik ve dayanıklılık sağlayan diğer polimerlerle kombinasyon halinde mantar hücre duvarlarının yapısal bileşenleri olarak tanımlanır. Glukanların çeşitli sitoplazmik ve hücre dışı işlevlere sahip olduğuna inanılmaktadır. β-glukanlar muhtemelen, karbon sınırlama koşulları altında kullanılabilen karbon depolama materyalleri olarak işlev görürler ve bu da hayatta kalmada önemli bir role işaret eder [ 26 ]. Glukanazın en yaygın kabul gören biyolojik rolü, morfogenetik olaylar sırasında hücre duvarı glukanının hidrolizi ile sınırlıdır. β-glukanazın C. albicans hücre duvarı ile ilişkili olduğu tarif edilmiştir [ 14 ]. C. albicans'ta , ekzo -1,3 -β-glukanazın, esas olarak germ tüpü oluşumu sırasında salgılandığı ve ihraç edildiği bulundu [27 ]. Ekzo -1,3-β-glukanaz, Candida hücre duvarında bulunan glukanaz aktivitesinin çoğundan sorumludur ; bu nedenle ekzo -1,3-β-glukanaz, Candida enfeksiyonlarına karşı olası bir ilaç hedefi olarak kabul edilebilir . β-glukanazlar, Uluslararası Biyokimya ve Moleküler Biyoloji Birliği (IUBMB) (IUB, 1992) tarafından hidrolize ettikleri β-glukosidik bağların tipine ve spesifik substratlara karşı hidrolitik etkilerine göre sınıflandırılır. Cutfield ve arkadaşları Candida albicans'tan ekzo -1,3-β-glukanazın yapısını doğal ve bağlı formlarda çözmelerine rağmen, bu enzimin incelenmesi için çok az kristalografik veri mevcuttur [ 14]. Enzimin aktif cebi, Arg92 (β2 sarmalından), His135 (β3), Asn191, Glu192 (β4 ve α4 arasında, His253, Tyr255 (β6'nın sonu), Glu292 (β7) ve Trp363 (β8'in sonu) gibi glikosil hidrolaz ailesi 5'in (GH5) aktif bölgesini tanımlayan yüksek düzeyde korunmuş sekiz kalıntıdan oluşur [1 4] Son aktif bölge etiketleme ve mutagenez deneyleri, enzimin katalitik kalıntılarını tanımlamıştır (proton donörleri olarak Glu192 ve nükleofil olarak Glu292) [28] Buna göre, aktif bölge, bir nükleofil ve asit/baz grubu olarak işlev gören )iki glutamat kalıntısı içerir [ 14 ] .-1,3-β-glukanaz enzimi, glukozil hidrolaz ve transglikosilaz aktiviteleri yoluyla hücre duvarı β-glukan yeniden modellenmesinde yer alır. Exg, su dışındaki bir akseptörün glikosil-enzim ara maddesinden [ 12 ] glikozu geri kazanabildiği transferaz aktivitesini temsil eder. Bu aktiviteler, morfogenez sırasında hücre duvarını şekillendirmek için çok önemli olabilir. Bir çift yer değiştirme reaksiyonu, bir glikosil-enzim ara ürününün oluşumunu içerir ve müteakip hidroliz (veya transglikosilasyon), bir oksokarbenyum iyon benzeri geçiş durumları yoluyla ilerler [29 ] . Katalitik alan, (β/α) 8 tarafından desteklenen uzatılmış bir bağlanma yarığı veya oluğu sergiler.varil yapısı. Enzim, katalitik merkezin etrafındaki bu sekiz korunmuş tortunun yanı sıra, β-1,3-glukan zinciriyle etkileşime giren aromatik tortular da içerir [ 29 ]. β-1,3-glukan zincirinin ekzo -1,3-β-glukanaz enziminin cebine girmesi, terminal glikoz kalıntısının -1 konumunda koltuktan bükülmüş tekneye konformasyonunda bir değişikliğe neden olur. Bununla birlikte, cebin geometrisi, β-1,4-glikosidik bağın ayrılması için pek uygun değildir [ 14 ]. Özellikle, iki glikoz bağlama bölgesi tanımlanmıştır. Birincisi Glu27'yi, ikincisi ise Phe144 ve Phe258'i içerir. Mutajenezin sonucu ayrıca, fenilalanin kalıntılarının sağladığı aromatikliğin, k katını değiştirerek sıkıştırmak için çok önemli bir özellik sağladığını gösterir.ve km . Phe144 ve Phe258 kalıntı çiftinin, enzimin hem hidroliz hem de transferaz aktivitesi olan aktif bölgeden hem girişi hem de salınımı kontrol ettiği bulundu. Enzimin boş bir kelepçesi, hidrolize glikozun hızlı difüzyonuna izin verirken, dolu bir kelepçe, alıcının, enzim ara maddesinde bulunan terminal glikozu yakalamasına izin verir. Her iki Phe kalıntısı da tüm mantar ekzo -1,3-β-glukanazları arasında yüksek oranda korunur ve enzimin özgüllüğü ve katalitik etkinliği ile ilişkilidir. Phe-Phe ağ geçidinin mutagenezinden elde edilen sonuçlar, bunun sadece giriş yolunun aromatik doğasını korumakla kalmayıp, aynı zamanda indirgeyici olmayan uçta glikosidik bağ bölünmesi için tam polar olmayan ve daha az hacimli çiftleşme substratı sağladığını göstermektedir [14] ., 29 ]. Bu bilgileri göz önünde bulundurarak, söz konusu kalıntıların enzime güçlü bağlanma ve potansiyel inhibisyonu elde etmek için potansiyel ligandlar tarafından hedeflenmesinin çok önemli olduğunu düşündük. Buna göre görsel inceleme, hidrofobik temaslarda Phe kalıntılarını içeren bu tür olası etkileşim modeli dikkate alınarak gerçekleştirildi. Tablo S1'de bildirilen sanal taramanın sonuçları, ekzo -1,3-β-glukanaz enzimi ile potansiyel olarak etkileşime girebilen en umut verici bileşikleri vurguladı .

        Moleküler yerleştirmenin amacı, bir arama algoritması kullanarak bir ligandın bir proteine ​​potansiyel bağlanma modunu belirlemektir. AutoDock 4.2, en düşük bağlanma enerjilerine dayanan protein-ligand konformasyon çalışmasına yardımcı olan Lamarck Genetik Algoritması (LGA) prensibi üzerinde çalışır [ 30 ]. Moleküler yerleştirme çalışmaları tarafından sağlanan tahminin ardından ve daha önce belirtildiği gibi yerleştirilmiş pozların görsel incelemesinden sonra, Tablo S1'de gösterildiği gibi bileşikleri hesaplama puanına göre sıraladık.. Ligandın seçilen reseptör ile en düşük hesaplama puanı, ligandın dikkate alınan enzim ile tatmin edici bir şekilde etkileşime girebileceğini gösterir. Her fito bileşik, inhibisyon sabiti ve enzimin aktif bölgesi ile kurulabilen hidrojen bağlarının sayısı açısından analiz edildi.tablo 1fito bileşiklerin adını, kimyasal yapıyı, inhibisyon sabitini ve hidrojen bağı oluşumunda yer alan etkileşimli kalıntıların sayısını bildirir. Bağlanma enerjisi ne kadar negatif olursa, bağlanma etkinliği o kadar yüksek olur; böylece dikkate alınan ligand, seçilen ilaç hedefini etkili bir şekilde bağlayabilir. tablo 1


        Dört potansiyel yeni ekzo -1,3-β-glukanaz inhibitörünün yerleştirme sonuçlarının karşılaştırılması .
        Sesamin
        (Lignan)
        -12.21 1.11 His254, Asn146, Gly306
        Pinoresinol
        (Lignan)
        -11.50 3.71 Asp145, Asn146, His254
        Kaflanon
        (Flavonoid)
        -11.48 3.80 Asp145, Tyr255
        Herbaketin
        (Flavonoid)
        -11.03 8.21 Glu27, Glu192, Ser292, Leu304
        Ayrı bir pencerede aç
        Hesaplama sonuçlarına dayanarak, sesamin (tablo 1), hedeflenen enzimin seçilen bağlanma bölgesi içindeki güçlü etkileşimi ve önemli hesaplama puanı nedeniyle en umut verici bileşiklerden biri olarak. Seçilen mantar proteini ile bir hit bileşik olarak sesamin'in çeşitli kenetlenme pozları Tablo S2'de açıklanmaktadır .

        Tablo 2ekzo -1,3-β-glukanazın aktif bölgesi içinde bulunan ana etkileşimlerle birlikte hesaplama parametrelerini gösterir ve en umut verici taranan fitobileşiklerden biri olan sesamin göz önünde bulundurulur. İnhibisyon sabiti, bir enzimin bir bileşik tarafından maksimum yarı yarıya inhibisyonu olarak tanımlanır ve genellikle substrat veya inhibitörün enzimlerin biyolojik aktivitesini artırma/engelleme potansiyelini belirlemek için kullanılır. Sonuçlardan, sesaminin 1.11 nM'lik bir tahmin edilen inhibisyon sabit değerine sahip olduğu bulundu. Özellikle, 100 uM'den düşük bir inhibisyon sabit değerine sahip bileşikler, potansiyel inhibitörler olarak tanımlanırken, 100 uM'den daha yüksek değerler gösteren bileşikler, güçlü olmayan inhibitörler olarak kabul edilir [31 ] . Tablo 2


        Yeni inhibitörün (sesamin) ekzo -1,3-β-glukanaz'a (PDB ID: 4M80) karşı yerleştirme sonuçları.
        sesamin Izgara kutusu merkez koordinatları
        Merkez-x = 4,075
        Merkez-y = 64,791
        Merkez-z = 9,706
        Izgara kutusu Boyut
        x boyutu = 48
        boyut-y = 62
        boyut z = 46
        -12.21 1.11 Phe144, Asp145, Asn146, Glu192, Phe229, Tyr255, Phe258, Gly306
        Ayrı bir pencerede aç
        Daha önce tartışılan ekzo -1,3-β-glukanaz enzim mekanizması göz önüne alındığında ,şekil 2sesamin tarafından enzimin bağlanma bölgesi içinde kurulan olası etkileşimlerin şematik gösterimi. Phe144 ve Phe258 kalıntılarının, Trp363 tarafından tanımlanan cebin tabanından yaklaşık 10 Å yukarıda farklı bir geçit oluşturduğu düşünülürse, bu aromatik geçit, β-1,3-glukan substratının girişini ve serbest glukoz ürününün çıkışını veya alternatif olarak bir akseptöre glukozil transferini kontrol etmek için bir kıskaç görevi görür [29 ] . Ekzo -1,3-β-glukanaz enziminin Phe-Phe kelepçesindeki karbonhidrat-protein etkileşimleri, geçiş durumu etkileşim enerjisinde önemli bir katkı sağlar. Bu şeker bağlama bölgesi, substrat tanıma için çok önemlidir. Yerli exo'da-1,3-β-glukanaz yapısı, fenilalanin halkaları arasındaki boşluk, büyük ölçüde düzensiz bir dizi su molekülü tarafından işgal edilir. Sandalye konformasyonunda 4 Cı'deki şeker parçası, Phe144 ve Phe258 kalıntıları arasında paralel uzanır. Bu cep, sesamin (şekil 2VeFigür 3). Son olarak, +1 alt bölgesinin önemi, kinetik çalışmalardan türetilen bağlanma enerjilerinde yer alan iki fenilalanin kalıntısının bölgeye yönelik mutajenez çalışmaları yoluyla gözlemlendi [29 ] .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g002.jpg'dir.

        şekil 2
        Phe – Phe kelepçesini ve Phe229'u gösteren aktif bölge cebinde sesamin bağlanması. β-1,3-glukan zincirinin karbonhidrat bağlanması bu −1, +1 alt sitesinde ve +2 alt sitesinde meydana gelirken, glikosidik bağ bölünmesi -1 ve +1 alt sitesinde meydana gelir.


        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g003.jpg'dir.

        Figür 3
        Sesaminin ekzo -1,3-β-glukanaz bağlama bölgesi içindeki ana etkileşimleri. ( A ) 3 boyutlu etkileşim modeli. ( B ) ekzo -1,3-p-glukanazın seçilen bağlanma bölgesi içinde sesamin tarafından kurulan ana etkileşimlerin 2B şematik gösterimi .

        Buna göre bileşik, bir ekzo -1,3-p-glukanaz enzim bağlayıcısı gibi davranabilir . Aslında, bildirildiği gibiTablo 2, sesamin, seçilen mantar proteini ile ilgili bir kenetlenme skoru gösterdi. Kısaca sesamin, H bağları ile Phe144, Asn146 ve Gly306 gibi bağlanma bölgesindeki önemli kalıntıları hedefleyebilirken, Phe229 ve Tyr255 ile π-π istifleme oluşturabilen güçlü hidrofobik etkileşimler kurabilirken, Phe258 ile bir π-alkil etkileşimi tespit ettik (Figür 3). Ayrıca, sesamin, gösterildiği gibi π-alkil ve karbon-hidrojen bağları yoluyla Phe-Phe kelepçesi ile etkileşime girebildi.Figür 3. Bununla birlikte sesamin, potansiyel bağlanma enerjisine en büyük katkıyı sağlayan Phe229 kalıntısı ile de etkileşime girebildi (Figür 3B). Buna göre, moleküler kenetlenme çalışmalarından, sesamin'in Phe144:Phe258 kıskacına ve Phe229 kalıntılarına bağlanarak Candida türlerinin ekzo -1,3-β-glukanazının aktif bölgesini hedefleyebildiği, böylece potansiyel olarak β-1,3-glukan zincirinin girişini bloke ettiği ve böylece morfogenetik anahtarlamayı inhibe ettiği gözlemlenmiştir .

        Yerleştirme sonuçlarını doğrulamak ve sesaminin bağlanmasının ekzo -1,3-β-glukanazın konformasyonel dinamikleri üzerindeki etkisini değerlendirmek, kompleksin kararlılığını ve ilgili zaman çizelgesi davranışını belirlemek için, ekzo -1,3 -β-glukanaz/sesamin kompleksi üzerinde 100 ns MD simülasyon çalışması gerçekleştirdik. Elde edilen yörünge, her bir omurga atomu ve ligandı için kök-ortalama-kare sapması (RMSD) değerlendirmesi ve her protein kalıntısının kök-ortalama-kare dalgalanması (RMSF) dahil olmak üzere farklı standart simülasyon parametreleri kullanılarak değerlendirildi. Bu çalışmanın sonuçları şu şekilde gösterilmektedir:Şekil 4A, B. Sonuç analizi, sistemin oldukça kararlı olduğunu gösterdi (Şekil 4A), sesaminin enzime bağlanması üzerine gözlenen yapısal stabilitede önemli bir değişiklik olmadan. İlginç bir şekilde, sesamin, moleküler yerleştirme çalışmalarında bulunan etkileşimleri, bağlanma bölgesi içinde ilgili bir hareket olmadan, etkileşimli konformasyonları koruyarak sürdürdü (Şekil 4A). RMSF değeri, protein atomik Ca koordinatları ile MD çalışması boyunca ortalama konumu arasındaki sapmayı temsil eder. RMSF değeri, spesifik protein omurga amino asitlerinin esnekliğini belirlemek için kullanışlıdır. bildirildiği gibiŞekil 4B, C-terminal bölgesinde bulunan bazı kalıntıların hariç tutulmasıyla enzimde küçük bir dalgalanma saptadık.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g004.jpg'dir.

        Şekil 4
        ( A ) Protein/ligand kompleksi (protein için mavi çizgi ve ligand için kırmızı çizgi) ile ilgili kök ortalama kare sapması (RMSD); ( B ) proteinin tüm kalıntılarının ortalama karekök dalgalanması (RMSF). Resimler, Desmond'da bulunan Simulation Event Analysis tarafından oluşturulmuştur.

        Sesamin'in seçilen bağlanma bölgesi içindeki dinamik davranışını daha iyi tanımlamak için aktif bölge içerisinde ligand tarafından oluşturulan ana temas noktalarını analiz ettik ve MD simülasyonunun zaman çizelgesi analizini bildirdik (Şekil 5, panel A ve B). Asp145 ve Asn146 ile kenetlenme çalışmaları ile bulunan H bağları, sporadik olarak su aracılı olmasına rağmen korunur. Ligand tarafından Tyr29, Phe144, Phe229, Tyr255 ve Phe258 ile kurulan hidrofobik temaslar, birkaç π – π istifleme dahil olmak üzere güçlü hidrofobik ağ temasları sağlayan simülasyon sırasında korunmuştur. Ayrıca, MD simülasyonu sırasında, ligandın Tyr255'in yan zinciri ile yeni bir önemli H bağı kurduğunu ve alınan bağlama modunun stabilize edilmesine katkıda bulunduğunu gözlemledik. Genel olarak, seçilen bağlanma bölgesi içindeki ligandın hesaplama sonucu, sesamin'in seçilen enzimin potansiyel bir ligandı gibi davranabileceğini gösterdi.

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g005.jpg'dir.

        Şekil 5
        ( A ) MD simülasyonu boyunca izlenen protein-ligand etkileşimleri. Etkileşimler dört tipte gruplandırılabilir: H bağları (yeşil), hidrofobik (gri), iyonik (macenta) ve su köprüleri (mavi). ( B ) Diyagram, ana etkileşimlerin bir zaman çizelgesi açıklamasını göstermektedir. Daha koyu bir turuncu tonu, bazı kalıntıların ligandla birçok farklı temas kurduğunu gösterir.

        Diğer üst sıradaki bileşikler (pinoresinol, caflanon ve herbacetin) için kısa bir tartışma boyunca hesaplama çıktısı, Ek Malzemeler dosyasında açıklanmıştır . Özellikle, Şekil S1–S3'te ekzo -1,3-β-glukanaz bağlama bölgesi içindeki pinoresinolün in silico değerlendirmesi rapor edilmiştir, Şekil S4–S6'da kaflanon ile ilgili hesaplamalı araştırmanın sonucu gösterilmektedir ve Şekil S7–S9'da herbasetin ile ilgili hesaplamalı çalışmaların sonucu rapor edilmektedir.

        Ayrıca, sesamin ve diğer üst sıradaki bileşiklerin bir ekzo -1,3-β-glukanaz bağlayıcı olarak hareket edebilme olasılığına ilişkin daha fazla kanıt sağlamak için , MD çalışmalarından elde edilen tüm yörüngeyi kullanarak fito bileşiklerin ekzo -1,3-β-glukanaza ΔG bağlanmasını hesapladık . Bu hesaplamanın çıktısı şu şekilde rapor edilir:Tablo 3. Elde edilen verilere dayanarak, sesamin'in tatmin edici bir ΔG bağı göstererek ekzo -1,3-β-glukanaz enzimini hedefleyebileceğini ve hesaplanan ΔG bağına ana katkının ΔG vdw ve ΔG Pack parametreleri tarafından önerildiği gibi hidrofobik etkileşimlerden temsil edildiğini doğruladık . Ek olarak, üst sıradaki bileşikler, bağlanma enerjileri açısından tatmin edici parametreler gösterdi. Tablo 3


        MM-GBSA hesaplamasından tahmin edilen serbest bağlanma enerjileri (ΔG bağı ) ve ekzo -1,3-β-glukanaz ile kompleks halinde en üst sıradaki bileşiklerin enerji bileşenleri .
        sesamin -45.74 -14.29 -1.14 -29,53 -4.91 26.31 -61,67
        Pinoresinol -43,91 -12.11 -1.07 -26.82 -2.11 24.67 -59,31
        kaflanon -35.17 -9.23 -1.04 -27.14 -0,73 19.16 -53,22
        Herbaketin -34,28 -13,48 -3.22 -28,79 -4.31 20.37 -58,87
        Ayrı bir pencerede aç
        a van der Waals etkileşim enerjisinin bağlayıcı serbest enerjiye katkısı; b Coulomb enerjisinin bağlayıcı serbest enerjiye katkısı; c bağlayıcı serbest enerjiye hidrojen bağı katkısı; d lipofilik enerjinin bağlayıcı serbest enerjiye katkısı; e π−π paketleme enerjisinin bağlayıcı serbest enerjiye katkısı; f genelleştirilmiş Born elektrostatik çözme enerjisinin bağlayıcı serbest enerjiye katkısı; g toplam bağlanma serbest enerjisi.

        Sesamin ve diğer bitkisel bileşiklerin çeşitli özellikleri, İsviçre ADME sunucusu kullanılarak analiz edildi (Tablo 4). Bahsedilen araç sayesinde, moleküler ağırlık, ağır atom sayısı, dönebilen bağlar, H-bağı vericisi, H-bağı alıcıları, aromatik ağır atomlar, Csp 3 gibi çeşitli parametrelerfraksiyon, molar kırılma ve toplam polar yüzey alanı (TPSA) belirlendi. Farmakokinetik özellikler, genel ilaç benzerliğini oluşturmak için seçilen bileşikler için belirlendi. İnsanlar tarafından pasif olarak gastrointestinal absorpsiyonun ve kan-beyin bariyerini geçme yeteneğinin incelenmesi, ilaçların gereksinim yerine verilmesi için önemlidir ve SwissADME aracılığıyla hesaplanır. Bileşiklerin metabolizması, P-gp'nin ve CYP450'nin beş ana izoformunun (CYP1A2, CYP2C9, CYP2C19, CYP2D6 ve CYP3A4) rolü dikkate alınarak değerlendirildi. Bu izoformlardan herhangi birinin inhibisyonu, ilacın klirensinde ve metabolizmasında azalmaya bağlı olarak ilaç birikimine yol açacaktır. SwissADME aracı, molekülün CYP450 izoformlarının olası bir inhibitörü ile birlikte bir P-gp substratı olma olasılığının yüksek olup olmadığını gösteren 'evet' veya 'hayır' şeklinde bilgi sağlar. İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( İlaç benzerliği, beş farklı filtre aracılığıyla belirlendi. Filtreler arasında Lipinski (ilaçta daha az başarısızlıkla sonuçlanan preklinik gelişimi belirlemeye yardımcı olur), Ghose (ilaç benzeri özellikleri nicel olarak tahmin eder), Veber (ilaç molekülünün oral biyoyararlanımını bulmaya yardımcı olur), Egan (hidrojen bağı vericisini bulmak için kullanılır) ve Muegge (ilaç benzeri olmayan moleküller için kullanılır) bulunur. Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( ve Muegge (ilaç benzeri olmayan moleküller için kullanılır). Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler ( ve Muegge (ilaç benzeri olmayan moleküller için kullanılır). Ayrıca, biyoyararlanım skoru, izin verilen aralıkta yer alan ve 0,55 değerini gösteren bir sıçan modelinde ilacın oral biyoyararlanımını belirler (Tablo 4). Tablo 4


        En üst sıradaki fito bileşiklerin ilaca benzerliği ve ADME profili.
        fizikokimyasal parametre
        Moleküler formül C 20 H 22 O 6 C 21 H 20 O 6 C 15 H 10 O 7 C 20 H 18 O 6 C 13 H 12 F 2 N 6 O
        Dönebilen bağ sayısı 4 4 1 5
        Molar kırılma 94.90 104.20 78.03 90.00 70.71
        Kesir Csp 3 0.40 0.19 0.00 0.40 0.23
        ağır atom sayısı 26 27 22 26 22
        Aromatik ağır atom sayısı 12 16 16 12 16
        TPSA 77,38 Å 2 100,13 Å 2 131,36 Å 2 55,38 Å 2 81.65 Å 2
        lipofiliklik
        Günlük G o/w (iLOGP) 2,67 3.29 1.50 3.46 0,41
        Günlük Güç ( XLOGP3) 2.28 5.03 2.17 2,68 0,35
        Günlük G o/w (WLOGP) 2.54 4.09 1.99 2,57 1.47
        Günlük G o/w (MLOGP) 1.17 1.31 -0,56 1.98 1.47
        Günlük Güç ( SILICOS-IT) 2,66 4.28 1.54 3.25 0,71
        Mutabakat Günlüğü P o/w 2.26 3.60 1.33 2,79 0,88
        Farmakokinetik
        GI emilimi Yüksek Yüksek Yüksek Yüksek Yüksek
        BBB geçirgen Evet HAYIR HAYIR Evet HAYIR
        P-gp substrat Evet HAYIR HAYIR HAYIR Evet
        CYP1A2 inhibitörü HAYIR HAYIR Evet HAYIR HAYIR
        CYP2C19 inhibitörü HAYIR HAYIR HAYIR Evet Evet
        CYP2C9 inhibitörü HAYIR Evet HAYIR HAYIR HAYIR
        CYP2D6 inhibitörü Evet HAYIR Evet Evet HAYIR
        CYP3A4 inhibitörü Evet HAYIR Evet Evet HAYIR
        Günlük K p (cilt geçirgenliği) −6,87 cm/sn −4,98 cm/sn −6,60 cm/sn −6,56 cm/sn −7,92 cm/sn
        Uyuşturucu benzerliği
        Lipinski Evet; 0 ihlal Evet; 0 ihlal Evet; 0 ihlal Evet; 0 ihlal Evet: 0 ihlal
        kaz Evet Evet Evet Evet Evet
        Veber Evet Evet Evet Evet Evet
        Egan Evet Evet Evet Evet Evet
        Müge Evet HAYIR; 1 ihlal: XLOGP3>5 Evet Evet Evet
        biyoyararlanım puanı 0,55 0,55 0,55 0,55 0,55
        Ayrı bir pencerede aç
        Sesamin'in biyoyararlanım radar grafiğiŞekil 6pembe bölgenin oral biyoyararlanım için uygun bir fizikokimyasal alan olduğunu göstermektedir. Uygun fizikokimyasal alanın renkli bölgesi LIPO (lipofilisite) değerini gösterir; Sesamin için XLOGP3 (2,68), SIZE (moleküler ağırlık 354,35 g/mol), POLAR (polarite 55,38), INSOLU (çözünmezlik, -3,93) ve FLEX (esneklik, dönebilen bağ sayısı 6).

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g006.jpg'dir.

        Şekil 6
        Sesamin'in biyoyararlanım radar grafiği; pembe alan oral biyoyararlanım için uygun fizikokimyasal boşluktur LIPO (lipofilisite): -0,7 < XLOGP3 < +5,0, BOYUT: 150 g/mol < MW < 500 g/mol, POLAR (polarite): 20 < TPSA < 130, INSOLU (çözünmezlik): -6 < Log S (ESOL) < 0, INSATU (doymamışlık): 0,25 < Fra Csp 3 < 1, FLEX (esneklik): 0 < Num . dönebilen bağlar < 9. 2.2. Biyolojik Değerlendirme


        2.2.1. Disk Difüzyon Yöntemiyle İlaç Duyarlılık Testi


        İnsan mantar patojeninin sesamine ilaç duyarlılığı disk difüzyon yöntemi kullanılarak belirlendi (Şekil 7). İnhibisyon bölgesinin çapı hesaplandı ve deneyler üç kopya halinde gerçekleştirildi. Candida glabrata için sırasıyla 16 μg/mL ve 32 μg/mL sesamin konsantrasyonunda inhibisyon zonu 5 mm ve 5,2 mm olarak bulundu . Bu sırada flukonazol (10 μg/mL) ile Candida glabrata için 4,8 mm'lik bir inhibisyon zonu gözlemledik .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g007.jpg'dir.

        Şekil 7
        İnsan mantar patojeni Candida glabrata'ya karşı ilaç molekülünün oluşturduğu inhibisyon bölgesi . A, 32 μg/mL sesamin konsantrasyonundaki inhibisyon bölgesini temsil eder, B ve C, 16 μg/mL sesamin konsantrasyonundaki inhibisyon bölgesini temsil eder ve D, pozitif kontrol flukonazol ilacını (10 μg/mL) temsil eder.

        2.2.2. Minimum Engelleyici Konsantrasyon


        Sesamin'in Candida spp.'ye karşı MİK ve MFC değerleri . sırasıyla 16 ve 32 µg/mL bulundu (Tablo 5). Sesamin'in özellikle in vitro antifungal duyarlılığı C. albicans (ATCC 90028), C. parapsilosis (ATCC 22019), C. krusei (ATCC 6258) ve C. glabrata'ya (ATCC 15545) karşı değerlendirildi . Tablo 5


        Sesaminin in vitro antifungal duyarlılığı (değerler μg/mL cinsinden).
        C. albicans (ATCC 90028) 16 32 2 4 1 2
        C. glabrata (ATCC 15545) 16 32 1 2 0,5 2
        C. krusei (ATCC 6258) 16 32 16 32 1 2
        C. parapsilosis (ATCC 22019) 16 32 1 2 0,5 2
        Ayrı bir pencerede aç
        Muamele edilmemiş kontrol hücreleri, sesamin ile muamele edilmiş hücreler ile karşılaştırıldığında normal büyüme gösterdi.

        2.2.3. Nokta Tahlili


        Antifungal duyarlılık, katı besiyerinde spot deneyi ile incelenmiştir (Şekil 8, panel A ve B) doğrulama yöntemlerinden biri olarak. Candida hücreleri YEPD agarda 30 °C'de 48 saat büyütüldü. Yatay yöndeki beş nokta, hücre kültürünün seri seyreltilmesini temsil eder. Sesamin konsantrasyonuna bağlı olan Candida hücrelerinin büyümesinde önemli bir azalma olmuştur .

        İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-28-04658-g008.jpg'dir.

        Şekil 8
        ( A ) C. parapsilosis (ATCC 22019), C. glabrata (ATCC 15545), C. krusei (ATCC 6258), C. albicans (ATCC 90028) hücrelerinin MIC sesamin konsantrasyonu ve negatif kontrol olarak işlenmemiş C. parapsilosis (ATCC 22019) varlığında nokta tahlili profili .

        ( B ) Sesaminin MİK konsantrasyonunun (16 μg/mL'de) ( x ekseni - Candida spp. (dilüsyon) ve y ekseni - koloni sayısı) varlığıyla nokta analizi sonuçlarının grafiksel gösterimi .

        2.2.4. Sinerjik Çalışma

        Sinerjizm, tek başına hareket ettiğinde her ilacın etkilerinin toplamından daha büyük bir etki sergileyen iki veya daha fazla bileşik arasındaki etkileşim olarak tanımlanabilecek ilaç kombinasyonlarına uygulanır. Sinerjistik ilaç kombinasyonu, ilaç etkinliğini artırarak ve ilaç toksisitesini azaltarak tek ilaç kullanımının dozunu azaltır. Ayrıca, ilaç direncinin ortaya çıkmasıyla ilgili sorun, çoklu hedef stratejisi ile azaltılabilir. Şiddetli invaziv fungal enfeksiyonlarla mücadelede iki veya daha fazla antifungal ilacın kullanılması uzun süredir kliniklerde daha iyi bir alternatif olarak kabul edilmektedir. İnvaziv kandidiyazis için sinerjistik tedavinin ilk bildirilen uygulaması flusitozin ve amfoterisin B'dir [ 32]. Mevcut çalışmada, farklı Candida türlerine karşı flukonazol kullanılarak sesamin ile sinerjik deneyler yapılmıştır. Sesamin ile birlikte flukonazolün (Hindistan'da ana pazarlanan antifungal ilaç) hesaplanan FICI değeri 0.5'ten düşüktü, bu da iki ilaç arasında sinerjistik bir etkileşim modu olduğunu düşündürür.Tablo 6). Tablo 6


        Tanımlanan bileşik sesamin ile pazarlanan ilaç flukonazolü dikkate alan sinerjistik çalışma.
        C. albicans (ATCC 90028) 16 2 0,125 0,125 0.07 sinerjik
        C. parapsilosis (ATCC 22019) 16 2 0,125 0,125 0.07 sinerjik
        C. krusei (ATCC 6258) 16 16 0,5 0,125 0.03 sinerjik
        C. glabrata (ATCC 15545) 16 1 0,125 0,125 0.13 sinerjik
        Ayrı bir pencerede aç
        Git: 3. Malzemeler ve Yöntemler

        3.1. Hesaplamalı Ayrıntılar


        3.1.1. Fitokimyasal Kitaplık Hazırlama


        Uygun fitokimyasallar, 'fitokimyasallar' ve 'mantar önleyici aktivite' gibi anahtar kelimeler kullanılarak PubChem, Google Scholar ve ScienceDirect'ten seçildi. Bu arama yöntemini takiben, uygun Lipinski kuralıyla (Tablo S1) fenoller, flavonoidler, tanenler, terpenoidler, alkaloitler, kinonlar, kumarinler ve lignanlar gibi farklı sınıflara ait 40 doğal fito bileşik içeren küçük bir kitaplık oluşturduk (Tablo S1) [ 33 ] .

        3.1.2. Moleküler Yerleştirme


        Mantar proteini ekso -1,3-β-glukanazın (PDB ID 4M80) 3 boyutlu yapısı Protein Veritabanı Bankasından alınmıştır [ 34 ]. Seçilen kütüphanedeki tüm bileşiklerin 3 boyutlu yapıları MGL araçları kullanılarak pdbqt dosyalarına dönüştürüldü. Moleküler yerleştirme, AutoDock Tools-1.5.7 aracılığıyla AutoDock 4.2 yazılımı kullanılarak gerçekleştirildi [ 30]. Kısaca, protein PDB dosyası AutoDock Araçlarında açıldı. Su molekülleri ve herhangi bir bağlı ligand silindi, ardından protein molekülüne Kollmann yükleri eklendi. Izgara parametresi, analiz için aktif protein bölgesini kapsayacak şekilde seçildi. Bu çalışmada ızgara aralığı 0,375 Å (varsayılan) olarak ayarlanmıştır ve merkez ızgara kutusu değerleri sırasıyla x = 4,075, y = 64,791 ve z = 9,706 olarak ayarlanmıştır. x, y ve z boyutları boyunca ızgara noktalarının sayısı 48 × 62 × 46 olarak ayarlandı. Autogrid'in başarıyla tamamlanmasının ardından, Genetik Algoritma (GA) varsayılan olarak şu şekilde ayarlandı: (1) GA çalıştırma sayısı, 50; (2) nüfus büyüklüğü, 100; (3) enerji değerlendirmesi sayısı, 2,5 milyon (2,0 Å kümelenmiş tolerans); ve (4) nesil sayısı, 27000. Bundan sonra, yerleştirme kompleksi, AutoDock Araçlarından pdbqt dosya biçiminde alındı. Ligandlar ve seçilen protein arasındaki etkileşimler, etkileşen protein kalıntılarıyla birlikte kenetlenme skoru (yani bağlanma enerjisi, kcal/mol) ve inhibisyon sabiti (nM) temelinde hesaplandı. Proteinlerin Yüzey Topografisi için Bilgisayarlı Atlas (CASTp) [35 ] ve Biovia Discovery Studio (Discovery Studio, sürüm 4.5, San Diego: Dassault Systèmes, Biovia, 2019), proteinin aktif bölgesinde bulunan amino asitleri belirlemek için kullanıldı.

        3.1.3. Moleküler Dinamik (MD)


        MD simülasyonları, daha önce tarafımızdan [ 36 , 37 ] açıklandığı gibi Desmond 5.6 akademik versiyonu (Desmond Molecular Dynamics System, versiyon 5.6, DE Shaw Research, New York, NY, 2018. Maestro-Desmond Interoperability Tools, Schrödinger, New York, NY, ABD, 2018) kullanılarak yapıldı . Moleküler yerleştirme araştırmasından elde edilen kompleks, Desmond sistem oluşturucu kullanılarak suyla dolu ortorombik bir kutuya (TIP3P modeli) çözüldü. MD simülasyonu, tek değerlikli iyonlar (Na + ve Cl -) kullanılarak OPLS'yi kuvvet alanı olarak benimseyerek gerçekleştirildi., 0,15 M'lik fizyolojik konsantrasyon, sabit sıcaklıkta (310 K) ve basınçta (1,01325 bar), topluluk sınıfı NPT (sabit sayıda parçacık, basınç ve sıcaklık) ile. Hareket denklemlerini entegre etmek için bir RESPA entegratörü uygulandı (2.0 fs'lik iç zaman adımı). Sabit bir simülasyon sıcaklığını korumak için Nose-Hoover termostatları kullanıldı ve basıncı kontrol etmek için Martyna-Tobias-Klein yöntemi uygulandı. Uzun menzilli elektrostatik etkileşimler, van der Waals ve kısa menzilli elektrostatik etkileşimler için 9.0 Å ile parçacık ağlı Ewald yöntemi (PME) ile hesaplandı. Sistemin dengelenmesi, Desmond'da sağlanan varsayılan protokol kullanılarak gerçekleştirildi. Sonuç olarak, 100 ns'lik bir bireysel yörünge hesaplandı. Daha güvenilir çıktı sağlamak için MD simülasyon deneyleri iki kez tekrarlandı. Yörünge dosyaları, bu çalışmada sunulan MD simülasyon deneyine ilişkin tüm çizimleri oluşturmak için de kullanılan Desmond paketinde uygulanan Simulation Event tarafından analiz edildi. Ayrıca, bağlanma enerjisini hesapladık (ΔGDesmond'da bulunan termal MM-GBSA komut dosyasını ( thermal_mmgbsa.py ) kullanarak Desmond tarafından elde edilen yörüngeden hedef protein içindeki sesaminin bağlanması ). Bu araç, Desmond MD yörüngesini kullanır, onu ayrı çerçeve anlık görüntülerine böler ve her birini MM-GBSA analizi yoluyla yürütür. MM-GBSA hesaplaması sırasında, ortalama bağlanma serbest enerjisini hesaplamak için girdi olarak 100 ns MD simülasyonundan 1000 anlık görüntü kullanıldı. Değerlendirilen ΔG bağı, hesaplamada kullanılan enerji bileşenleriyle birlikte Bölüm 2'de ortalama değer olarak rapor edilir .

        3.1.4. ADMET/Farmakokinetik Öngörüleri ve Biyoaktif Değerlendirme


        En umut verici fito bileşik sesamin'in ADMET özellikleri, İsviçre ADME aracı [ 38 ] kullanılarak değerlendirildi . Ligandın enzim veya protein ile etkileşimi, etkili bir ilaç olmasını sağlayamaz. İlaca benzerlik çalışmaları, bir molekülün biyoyararlanımı açısından oral bir ilaç gibi davranma olasılığını ölçmemize yardımcı olur. Çeşitli özelliklerin bilgisi, ilaç tasarımı süreci için esastır ve kabul edilemez ADMET özelliklerinin varlığı, ilacın klinik deneylerde başarısız olmasına yol açar. ADMET, fito bileşiğin ilaca benzer doğasının doğru özelliklerini verir ve kan-beyin bariyeri geçirgenliği, gastrointestinal absorpsiyon gibi parametrelerin sayısal değerlerini sağlar ve Ames testi, fare karsinojenitesi ve h gibi toksisite testleri hakkında bilgi sağlar .ERG inhibisyonu. 3.2. Bir Antifungal Ajan Olarak Sesamin'in Biyolojik Değerlendirmesi


        3.2.1. Büyüme Ortamı ve Kullanılan Suşlar


        Bu çalışmada kullanılan Candida suşları C. krusei (ATCC 6258), C. albicans (ATCC 90028), C. parapsilosis (ATCC 22019) ve C. glabrata (ATCC 15545) idi. Tüm Candida suşları -80 °C'de %30 ( v / v ) gliserol stokunda saklandı . Hücreler, Sabouraud dekstroz agar (SDA) plakasında taze olarak canlandırıldı ve YEPD suyuna aktarıldı. Hücreler, suşların canlanmasını sağlamak için her çalışmadan önce agar plakasında 30 °C'de büyütüldü. Tüm Candida suşları, %1 maya ekstraktı ( ağırlık / hacim ), pepton %2 ( ağırlık) bileşimi ile YEPD suyu içinde kültürlendi./ v ) ve dekstroz %2 ( w / v ). Agar plakaları için, ortama %2 ( w / v ) agar (HiMedia, Mumbai, Hindistan) eklendi. Sesamin ticari olarak Combi Blocks'tan (Saflık %98) satın alınmıştır.

        3.2.2. Aşı Hazırlama


        Süspansiyonlar, taze Candida kültürlerinden hazırlandı, agar plakalarına kaplandı ve 35 °C'de 24-48 saat inkübe edildi. İnkübasyondan sonra, kabaca 4-5 maya kolonisini (steril öze ile) 3 mL %0,85 salin solüsyonu içeren bir test tüpüne aktardık. Ortaya çıkan süspansiyonlar 15 saniye vortekslendi. Elde edilen son konsantrasyon 1-5 x 10⁶ koloni idi .

        3.2.3. Disk Difüzyon Deneyi


        Disk difüzyon testi tarif edildiği gibi yapıldı [ 39 ]. İlaçlar, istenen konsantrasyonda 10 uL'lik bir hacimde lekelendi ve ilgili inhibisyon bölgelerinin çapları, plakaların 30 °C'de 48 saat inkübasyonundan sonra ölçüldü.

        3.2.4. Nokta Tahlili


        Nokta tahlili için, her bir maya kültürünün (her biri 0.1'lik bir OD 600 nm'ye kadar normal salin içinde süspanse edilmiş hücrelere sahip) beş katlı seri dilüsyonlarının 5 uL'si, ilaçların yokluğunda (kontrol) ve varlığında YEPD plakalarına lekelendi. Büyüme farkı, 30 °C'de 48 saat inkübasyondan sonra ölçüldü [ 40 ].

        3.2.5. Minimum İnhibitör Konsantrasyon (MIC) ve Minimum Fungisidal Konsantrasyon (MFC) Tayini


        MIC, daha önce NCCLS [ 41 ] olan Clinical and Laboratory Standards Institute (CLSI)'nin M27-S4 yönteminde tarif edildiği gibi sıvı besiyeri seyreltme yöntemiyle belirlendi . Kısaca, ilacın geri kalan ortamla birlikte eklenmesinin ardından 96 oyuklu plakanın her bir oyuğuna 100 uL ortam yerleştirildi ve ardından seri olarak seyreltildi. Toplam 100 µL hücre süspansiyonu (normal salin içinde OD 600'e kadar)0.1) plakanın her bir oyuğuna eklendi. Paralel olarak, maya canlılığı ve flukonazol ve amfoterisin B'ye duyarlılık için kontroller oluşturuldu. Plakalar, 24-48 saat 35 °C'de inkübe edildi. Kuluçka süresinden sonra, üremenin varlığı veya yokluğu görsel olarak gözlendi. MIC, maya büyümesinin gözle görülür bir şekilde engellenmesini sağlayan en düşük konsantrasyon olarak tanımlandı. MFC, maya büyümesini tamamen engelleyen veya üçten az koloni oluşturan birimin (CFU) oluşmasına neden olarak mantar öldürücü aktiviteye neden olan test bileşiğinin en düşük konsantrasyonu olarak tanımlandı.

        3.2.6. Sinerjik Çalışma/Dama Tahtası Mikrodilüsyon Testi


        Standart bir antifungal ilaç olan flukonazol ile kombinasyon halinde sesamin'in antifungal aktivitesi, sinerjistik bir çalışma ile değerlendirildi. Bir mikrotitre plakasına toplam 50 uL sesamin (64 ila 0.5 ug/mL) ve 50 uL flukonazol (64 ila 0.125 ug/mL) ilave edildi. Her oyuk, 200 uL'lik bir nihai hacim oluşturmak için 100 uL mantar süspansiyonu ile aşılandı. Elde edilen dama tahtası plakaları, gece boyunca 37 °C'de inkübe edildi. Fraksiyonel inhibitör konsantrasyon indeksi (FICI), aşağıdaki denklem [ 42 ] kullanılarak hesaplandı :
        FIC Endeksi =Kombinasyon halinde Sesamin MİK'si _ Tek başına Sesamin'in MIC'si +Kombinasyon halinde Flukonazol MİK'si _ Tek başına Flukonazol MİK'si


        "Sinerji ve düşmanlık" sırasıyla FICI ≤ 0.5 ve > 4 ile tanımlandı. Bu arada, 'kısmi sinerjistik', 0,5 < FICI < 1 ile tanımlanırken, 'kayıtsızlık', 1 < FICI ≤ 4 ile tanımlandı.

        Git: 4. Sonuçlar


        Mantar hücre duvarı esas olarak adezyon için gerekli kitin, glukanlar, mannanlar ve glikoproteinlerden oluşur. Aynı zamanda koruyucu bir bariyer görevi görür. Hücre duvarı bileşenlerini ve enzimlerini hedeflemek, yeni antifungal ajanlar geliştirmek için çekici ilaç hedefleri olabilir. Bu çalışmada, yeni antifungal ajanları tanımlamak için in silico yöntemlere ve kapsamlı biyolojik değerlendirmeye dayalı entegre bir tarama platformu geliştirdik. Candida spp.'de bulunan ekzo -1,3-β-glukanaz enzimini hedefleyerek antifungal ajanlar olarak hareket edebilen doğal ürünleri seçmek için bu platformu kullandık . ekzo _-1,3-β-glukanaz enzimi, hidrolaz ve transglikosidaz aktiviteleri yoluyla β-D-glukan metabolizmasında ve nihai mantar morfogenezinde yer alır. Maya hipha morfolojik geçişi, konakçı dokuların mantar patogenezinde yer alan oldukça öldürücü bir özellik olarak tanımlanır. Moleküler yerleştirme, MD ve bileşiklerin ilaç benzeri profillerinin değerlendirilmesine dayalı hesaplama protokolümüzün ardından, sesamini olası bir antifungal profil ile donatılmış potansiyel bir ekzo -1,3-β-glukanaz bağlayıcı olarak tanımladık. Sesamin'in farklı Candida'ya karşı etkinliğini değerlendirmek için bir dizi in vitro test gerçekleştirerek in silico bulguları daha da doğruladık.türler. Sesamin, 16 μg/mL MİK değeri ile ilginç bir antifungal profil gösterdi. Agbo ve ark. Candida albicans'a (256 μg/mL) karşı çok daha yüksek bir sesamin MİK değeri belirlemiştir [ 24 ], bu da mevcut çalışmayı son derece alakalı kılmaktadır. Sesaminin referans ilaç flukonazol ile sinerjistik çalışmalarını da gerçekleştirdik ve ilginç sonuçlar elde ettik. Buna göre, mevcut çalışma, düşük toksisitesi, kolay bulunabilirliği ve önemli antifungal aktivitesi nedeniyle mantar enfeksiyonlarına karşı yeni terapötik ajanlar geliştirmek için ilginç bir iskele olarak doğal ürün sesamin'i vurgulamaktadır.

        Git: teşekkürler


        Yazarlar sürekli destek ve teşvikleri için Müdür, Ramjas Koleji ve Delhi Üniversitesi Hindu Koleji'ne şükranlarını sunarlar. KW ayrıca Genç Araştırma Bursları (JRF) şeklinde mali destek için Üniversite Hibe Komisyonu'na (UGC) teşekkür etmek ister. Yazarlar, deneylerin gerçekleştirilmesindeki değerli yardımları için Rijul Tandon'a teşekkür eder.

        Git: Tamamlayıcı Malzemeler


        Aşağıdaki destekleyici bilgiler şu adresten indirilebilir: https://www.mdpi.com/article/10.3390...les28124658/s1 , Şekiller S1–S9, en üst sıradaki bileşik (pinoresinol, kaflanon ve herbasetin) için hesaplama çıktısını açıklamaktadır; Tablolar S1 ve S2 yanaşma sonuçları.
        Ek veri dosyası için buraya tıklayın. (2,2M, zip)
        Git: Finansman Tablosu


        Bu araştırma herhangi bir dış finansman almamıştır.

        Git: Yazar Katkıları


        Kavramsallaştırma, NK ve SB; metodoloji, KW, HK, NK ve SB; yazılım, NK ve SB; doğrulama, KW, HK, NK ve SB; resmi analiz, KW, HK, NK ve SB; soruşturma, KW, HK, NK ve SB; veri iyileştirme, KW, HK, NK ve SB; yazma—orijinal taslak hazırlama, KW, NK ve SB; yazma—inceleme ve düzenleme, KW, HK, NK ve SB; süpervizyon, HK, NK ve SB Tüm yazarlar makalenin yayınlanan versiyonunu okumuş ve kabul etmiştir.

        Git: Kurumsal İnceleme Kurulu Beyanı


        Uygulanamaz.

        Git: Bilgilendirilmiş Onam Beyanı


        Uygulanamaz.

        Git: Veri Kullanılabilirliği Bildirimi


        Uygulanamaz.

        Git: Çıkar çatışmaları


        Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

        Git: Örnek Durumu


        Uygulanamaz.

        Git: Dipnotlar


        Sorumluluk Reddi/Yayıncının Notu: Tüm yayınlarda yer alan ifadeler, görüşler ve veriler yalnızca bireysel yazar(lar)a ve katkıda bulunan(lar)a aittir ve MDPI ve/veya editör(ler)e ait değildir. MDPI ve/veya editör(ler), içerikte atıfta bulunulan herhangi bir fikir, yöntem, talimat veya üründen kaynaklanan kişi veya mülk yaralanmalarından sorumluluk kabul etmez.


        Git: Referanslar

        1. Talapko J., Juzbasic M., Matijevic T., Pustijanac E., Bekic S., Kotris I., Skrlec I. Candida albicans—The Virulans Factors and Clinical Manifestations of Infection. J. Mantarlar. 2021; 7:79 . doi: 10.3390/jof7020079. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        2. Whaley SG, Berkow EL, Rybak JM, Nishimoto AT, Barker KS, Rogers PD Candida albicans ve Emerging Non-albicans Candida Türlerinde Azol Antifungal Direnç. Ön. Mikrobiyoloji. 2017; 7 :2173. doi: 10.3389/fmicb.2016.02173. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        3. Prasad R., Kapoor K. Candida mayasında çoklu ilaç direnci. Int. Cytol. 2005; 242 :215–248. doi: 10.1016/S0074-7696(04)42005-1. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        4. Nakatani Y., Larsen DS, Cutfield SM, Cutfield JF Candida albicans'tan elde edilen ekzo -1,3-beta-glukanazın bir glikosenteze dönüştürülmesinin ardından bölgesel özgüllükte büyük değişiklik . Biyokimya. 2014; 53 :3318–3326. doi: 10.1021/bi500239m. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        5. Mouyna I., Hartl L., Latge JP Aspergillus fumigatus'ta β-1,3-glukan değiştirici enzimler. Ön. Mikrobiyoloji. 2013; 4 :81. doi: 10.3389/fmicb.2013.00081. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        6. Latge JP Hücre duvarı: Mantar hücresi için bir karbonhidrat zırhı. Mol. Mikrobiyoloji. 2007; 66 :279–290. doi: 10.1111/j.1365-2958.2007.05872.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        7. Brown JA, Catley BJ Candida albicans'ta polisakarit sentezinin izlenmesi. Karbonhidrat. Res. 1992; 227 :195–202. doi: 10.1016/0008-6215(92)85071-7. [ CrossRef ] [ Google Akademik ]
        8. Rast DM, Baumgartner D., Mayer C., Hollenstein GO Mantarlarda hücre duvarı ile ilişkili enzimler. fitokimya. 2003; 64 :339–366. doi: 10.1016/S0031-9422(03)00350-9. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        9. Adams DJ Fungal hücre duvarı kitinazları ve glukanazlar. Mikrobiyoloji. 2004; 150 :2029–2035. doi: 10.1099/mic.0.26980-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        10. Larriba G., Andaluz E., Cueva R., Basco RD Maya eksoglukanazlarının moleküler biyolojisi. FEMS Mikrobiyoloji. Letonya 1995; 125 :121–126. doi: 10.1111/j.1574-6968.1995.tb07347.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        11. San Segundo P., Correa J., Vazquez de Aldana CR, del Rey F. SSG1, Saccharomyces cerevisiae'de bir sporülasyona özgü 1,3-beta-glukanazı kodlayan bir gen. J. Bacteriol. 1993; 175 :3823–3837. doi: 10.1128/jb.175.12.3823-3837.1993. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        12. Stubbs HJ, Brasch DJ, Emerson GW, Sullivan PA Candida albicans'ın beta-1,3-ekzoglukanazının hidrolaz ve transferaz aktiviteleri. Avro. J. Biochem. 1999; 263 :889–895. doi: 10.1046/j.1432-1327.1999.00581.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        13. Xu H., Nobile CJ, Dongari-Bagtzoglou A. Glucanase, mantar patojeni Candida albicans'ın filamentleşmesini indükler. PLoS BİR. 2013; 8 :e63736. doi: 10.1371/journal.pone.0063736. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        14. Cutfield SM, Davies GJ, Murshudov G., Anderson BF, Moody PC, Sullivan PA, Cutfield JF Candida albicans'tan ekzo -beta-(1,3)-glukanazın doğal ve bağlı formlardaki yapısı : 5 glikosil hidrolaz ailesindeki bir cep ve oluk arasındaki ilişki. J. Mol. Biol. 1999; 294 :771–783. doi: 10.1006/jmbi.1999.3287. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        15. Ogawa T., Nishio J., Okada S. Yenilebilir susam yağının Candida albicans'ın klinik izolatlarının büyümesi üzerindeki etkisi. Biol. Res. hemşireler. 2014; 16 :335–343. doi: 10.1177/1099800413501539. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        16. Nasim N., Sandeep IS, Mohanty S. İlaç keşfi için bitki kaynaklı doğal ürünler: Mevcut yaklaşımlar ve beklentiler. çekirdek. 2022; 65 :399–411. doi: 10.1007/s13237-022-00405-3. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        17. Harikumar KB, Sung B., Tharakan ST, Pandey MK, Joy B., Guha S., Krishnan S., Aggarwal BB Sesamin, NF-kappa B ile düzenlenen hücre sağkalımını, proliferasyonunu, istilasını ve anjiyojenik gen ürünlerini baskılayarak kemopreventif etkiler gösterir. Mol. Kanser Arş. 2010; 8 :751–761. doi: 10.1158/1541-7786.MCR-09-0565. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        18. Kumar A., ​​Mishra DC, Angadi UB, Yadav R., Rai A., Kumar D. Susamdan Türetilmiş Fitokimyasalların SARS-CoV-2 Ana Proteazına Karşı İnhibisyon Potansiyelleri: Bir Moleküler Yerleştirme ve Simülasyon Çalışması. Ön. kimya 2021; 9 :744376. doi: 10.3389/fchem.2021.744376. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        19. Mahendra Kumar C., Singh SA Susamdan elde edilen biyoaktif lignanlar ( Sesamum indicum L.): Gıda uygulamaları için antioksidan ve antibakteriyel etkilerinin değerlendirilmesi. J. Gıda Bilimi Teknoloji 2015; 52 :2934–2941. doi: 10.1007/s13197-014-1334-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        20. Andargie M., Vinas M., Rathgeb A., Moller E., Karlovsky P. Lignans of Susam ( Sesamum indicum L.): Kapsamlı Bir İnceleme. moleküller. 2021; 26 :883. doi: 10.3390/moleküller26040883. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        21. Michailidis D., Angelis A., Aligiannis N., Mitakou S., Skaltsounis L. Katı Desteksiz Sıvı-Sıvı Ekstraksiyonu ve Kromatografi Teknikleri Kullanılarak Susam Yağından Sesamin, Sesamolin ve Minör Lignanların Geri Kazanımı ve Bunların Enzimatik İnhibisyon Özelliklerinin Değerlendirilmesi. Ön. Eczane. 2019; 10 :723. doi: 10.3389/fphar.2019.00723. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        22. Ansari MA, Fatima Z., Hameed S. Sesamol: Gelecek vadeden antikandidal potansiyele sahip doğal bir fenolik bileşik. J. Pathog. 2014; 2014 :895193. doi: 10.1155/2014/895193. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        23. Alfuraydi AA, Devanesan S., Al-Ansari M., AlSalhi MS, Ranjitsingh AJ Susam yağı küspesinden gümüş nanopartiküllerin çevre dostu yeşil sentezi ve potansiyel antikanser ve antimikrobiyal aktiviteleri. J. Fotokim. Fotobiyol. B.2019 ; 192 :83–89. doi: 10.1016/j.jphotobiol.2019.01.011. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        24. Agbo J., Mpetga JDS, Bikanga R., Tchuenguem RT, Tsafack RBN, Awouafack MD, Dzoyem JP, Ito T., Morita H., Tane P. Caloncoba glauca'dan Yeni Bir Benzophenanthridine Alkaloid. Nat. Üretim komün. 2017; 12 :367–368. [ PubMed ] [ Google Akademik ]
        25. Chambers RS, Broughton MJ, Cannon RD, Carne A., Emerson GW, Sullivan PA Candida albicans'ın bir ekzo -beta-(1,3)-glukanazı: Enzimin saflaştırılması ve genin moleküler klonlanması. J. Gen. Microbiol. 1993; 139 :325–334. doi: 10.1099/00221287-139-2-325. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        26. Pitson SM, Seviour RJ, McDougall BM Selülolitik olmayan fungal beta-glukanazlar: Fizyolojileri ve düzenlemeleri. enzim. Mikrob. Teknoloji 1993; 15 :178–192. doi: 10.1016/0141-0229(93)90136-P. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        27. Chaffin WL, Lopez-Ribot JL, Casanova M., Gozalbo D., Martinez JP Candida albicans'ın hücre duvarı ve salgılanan proteinleri: Tanımlama, işlev ve ifade. Mikrobiyoloji. Mol. Biol. Rev. 1998; 62 :130–180. doi: 10.1128/MMBR.62.1.130-180.1998. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        28. Chambers RS, Walden AR, Brooke GS, Cutfield JF, Sullivan PA Candida albicans'ın ekzo -beta-(1,3) -glukanazında varsayılan bir aktif bölge tortusunun tanımlanması . FEBS Letonya 1993; 327 :366–369. doi: 10.1016/0014-5793(93)81022-R. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        29. Patrick WM, Nakatani Y., Cutfield SM, Sharpe ML, Ramsay RJ, Cutfield JF Candida albicans exo -beta-1,3- glucanase'de karbonhidrat bağlanma bölgeleri ve aktif bölge girişinde Phe-Phe "kelepçesinin" rolü. FEBS J.2010 ; 277 :4549–4561. doi: 10.1111/j.1742-4658.2010.07869.x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        30. Morris GM, Huey R., Lindstrom W., Sanner MF, Belew RK, Goodsell DS, Olson AJ AutoDock4 ve AutoDockTools4: Seçici reseptör esnekliği ile otomatik yerleştirme. J. Bilgisayar. kimya 2009; 30 :2785–2791. doi: 10.1002/jcc.21256. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        31. Zheng X., Polli J. Çözünen taşıyıcı taşıyıcılara karşı inhibisyon Ki değerlerini verimli bir şekilde taramak ve ölçmek için inhibitör konsantrasyonlarının tanımlanması. Avro. J. Ecz. bilim 2010; 41 :43–52. doi: 10.1016/j.ejps.2010.05.013. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        32. Hatipoğlu N., Hatipoğlu H. Çocuklarda ve yetişkinlerde invaziv mantar enfeksiyonları için kombinasyon antifungal tedavi. Uzman Rev. Bulaştır. 2013; 11 :523–535. doi: 10.1586/eri.13.29. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        33. Lipinski CA, Lombardo F., Dominy BW, Feeney PJ İlaç keşfi ve geliştirme ortamlarında çözünürlüğü ve geçirgenliği tahmin etmeye yönelik deneysel ve hesaplamalı yaklaşımlar. Av. Uyuşturucu Dağıtımı Rev. 2001; 46 :3–26. doi: 10.1016/S0169-409X(00)00129-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        34. Berman HM, Westbrook J., Feng Z., Gilliland G., Bhat TN, Weissig H., Shindyalov IN, Bourne PE The Protein Data Bank. Nükleik Asitler Res. 2000; 28 :235–242. doi: 10.1093/nar/28.1.235. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        35. Tian W., Chen C., Lei X., Zhao J., Liang J. CASTp 3.0: Proteinlerin yüzey topografisinin bilgisayarlı atlası. Nükleik Asitler Res. 2018; 46 :W363–W367. doi: 10.1093/nar/gky473. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        36. Kapoor N., Ghorai SM, Khuswaha PK, Bandichhor R., Brogi S. SARS-CoV-2 girişine müdahale etmek için insan ACE2 reseptörünün potansiyel bir bağlayıcısı olarak Butein: Bilgisayar destekli bir analiz. J. Mol. modeli. 2022; 28 :270. doi: 10.1007/s00894-022-05270-0. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        37. Sirous H., Chemi G., Campiani G., Brogi S. p53-MDM2 etkileşiminin gelecek vaat eden bozucularını belirlemek için entegre bir in silico tarama stratejisi. bilgisayar. Biol. kimya 2019; 83 :107105. doi: 10.1016/j.compbiolchem.2019.107105. [ PubMed ] [ CrossRef ] [ Google Scholar ]
        38. Daina A., Michielin O., Zoete V. SwissADME: Küçük moleküllerin farmakokinetiğini, ilaca benzerliğini ve tıbbi kimya dostluğunu değerlendirmek için ücretsiz bir web aracı. bilim 2017 ; 7 :42717. doi: 10.1038/srep42717. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        39. Hudzicki J. Kirby-Bauer Disk Difüzyon Duyarlılık Testi Protokolü. Amerikan Mikrobiyoloji Derneği; Washington, DC, ABD: 2009. [(15 Ocak 2023'te erişildi)]. Çevrimiçi olarak erişilebilir: https://www.asm.org/Protocols/Kirby-Bauer-Disk-Diffusion-Susceptibility-Test-Pro [ Google Scholar ]
        40. Prasad T., Chandra A., Mukhopadhyay CK, Prasad R. Candida spp.'nin demir ve ilaç direnci arasındaki beklenmeyen bağlantı : Demir tükenmesi, zar akışkanlığını ve ilaç difüzyonunu artırarak ilaca duyarlı hücrelere yol açar. Antimikrob. Ajan Chemother. 2006; 50 :3597–3606. doi: 10.1128/AAC.00653-06. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        41. Mayaların Broth Dilution Antifungal Duyarlılık Testi için CLSI (Klinik ve Laboratuvar Standartları Enstitüsü) Referans Yöntemi. Klinik ve Laboratuvar Standart Enstitüsü; Wayne, PA, ABD: 2012. Dördüncü Bilgi Eki M27-S4.Wayne. [ Google Akademik ]
        42. Marques MB, Brookings ES, Moser SA, Sonke PB, Waites KB Acinetobacter baumannii nozokomiyal izolatlarının karşılaştırmalı in vitro antimikrobiyal duyarlılıkları ve dokuz antimikrobiyal kombinasyonun sinerjistik aktiviteleri. Antimikrob. Ajan Chemother. 1997; 41 :881–885. doi: 10.1128/AAC.41.5.881. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

        Yorum yap


        • #5
          Candida albicans— Enfeksiyonun Virülans Faktörleri ve Klinik Belirtileri

          Jasminka Talapko , 1 Martina Juzbašić , 1 Tatjana Matijević , 2 Emina Pustijanac , 3 Sanja Bekić , 4, 5 Ivan Kotris , 6 ve Ivana Škrlec 1, *
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          1 Diş Hekimliği ve Sağlığı Fakültesi, Josip Juraj Strossmayer Osijek Üniversitesi, HR-31000 Osijek, Hırvatistan; rh.zmdf@okpalatj (JT); rh.zmdf@cisabzuj.anitram (MJ)
          2 Dermatoloji ve Venereoloji Bölümü, Klinik Hastane Merkezi Osijek, HR-31000 Osijek, Hırvatistan; moc.liamg@civecavok.7.anajtat
          3 Doğa Bilimleri Fakültesi, Juraj Dobrila Pula Üniversitesi, HR-52100 Pula, Hırvatistan; rh.upinu@canajitsup.anime
          4 Aile Hekimliği Uygulaması, HR-31000 Osijek, Hırvatistan; rh.sofem@cikebs
          5 Tıp Fakültesi, Josip Juraj Strossmayer Osijek Üniversitesi, HR-31000 Osijek, Hırvatistan
          6 Dahiliye Bölümü, General County Hospital Vukovar, HR-3200 Vukovar, Hırvatistan; rh.sofem@sirtoki
          * Yazışma: rh.zmdf@celrksi
          Git: Soyut


          Candida albicans , orofaringeal kavite, gastrointestinal ve vajinal sistem ve sağlıklı bireylerin cildini kolonize eden yaygın bir kommensal mantardır. Nüfusun %50'sinde C. albicans , mikrobiyotanın normal florasının bir parçasıdır. Candida türlerinin çeşitli klinik belirtileri, lokalize, yüzeysel mukokutanöz hastalıklardan çoklu organ sistemlerini tutan ve yaşamı tehdit eden invaziv hastalıklara kadar değişir. Sistemik ve yerelden kalıtsal ve çevresel faktörlere kadar çeşitli faktörler Candida'nın normal homeostazında bozulmalara yol açarak normal floradan patojenik ve fırsatçı enfeksiyonlara geçişe neden olur. Enfeksiyonun başlangıcı ve ilerlemesinin patofizyolojisindeki geçiş de aşağıdakilerden etkilenir:Candida'nın candidiasis gelişimine yol açan virülans özellikleri. Oral kandidiyaz, birincil ve ikincil kandidiyaza bölünmüş çok çeşitli klinik belirtilere sahiptir. C. albicans'ın vücuttaki ana kaynağı gastrointestinal sistemde bulunur ve enfeksiyonların gelişimi, yerleşik mikrobiyotanın disbiyozu, bağışıklık disfonksiyonu ve muko-intestinal bariyerin hasar görmesi nedeniyle oluşur . Kanda C. albicans'ın varlığı, kandidemi-invaziv Candida enfeksiyonları ile ilişkilidir. Kommensal ilişki, konakçı bağışıklık sistemi ile C. albicans'ın virülans faktörleri arasında bir denge olduğu sürece mevcuttur . Bu makale Candida albicans'ın virülans özelliklerini sunmaktadır.ve spesifik kandidiyazisin klinik belirtileri.

          Anahtar Kelimeler: Candida albicans , virülans özellikleri, oral kavite, gastroenteroloji, dermatoveneroloji
          Git: 1. Giriş

          1.1. Mantar enfeksiyonu


          Candida albicans gibi mantar enfeksiyonlarına neden olan patojenler yaygındır ve deri ve mukozal yüzeyi etkileyebilir ve sistemik enfeksiyona neden olabilir. Candida türleri 400.000 kadar sistemik mantar hastalığında mevcuttur [ 1 ]. Tüm türler arasında Candida albicans , mukozal enfeksiyonlara ve sistemik enfeksiyonlara en sık neden olan ajandır ve dünyadaki mantar enfeksiyonlarının yaklaşık %70'inden sorumludur [ 2 ]. Son birkaç on yıldır yaşamı tehdit eden invaziv enfeksiyonların önde gelen nedeni olmuştur. Tedaviye rağmen özellikle hastane koşullarında mortalite oranı %40'a yakındır [ 3 , 4]. Bu derleme, Candida albicans'ın virülans özelliklerine ve bunun ağız boşluğu, bağırsak mukozası, cilt ve invaziv enfeksiyonlardaki klinik belirtilerine genel bir bakış sağlamayı amaçlamaktadır. 1.2. Candida Albicans


          Candida albicans çeşitli morfolojik formlarda (blastosporlar, psödohifalar ve hifler) görülür (Şekil 1). Blastosporlar tomurcuklanarak aseksüel olarak bölünürler [ 5 , 6 ]. Bu işlem sırasında, blastosporun yüzeyinde yeni hücre materyali oluşur. Yeni tomurcuk, seçilmiş küçük bir blastospordan büyür ve çoğunlukla doğumdan kaynaklanan bir skar bölgesinden uzakta bulunur ve ardından büyüme aşaması başlar. Büyüme fazı sona erdikten sonra, hücreler bölünür ve yavru yavru ana hücreden bir bölüm oluşturarak ayrılır [ 6 ].

          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı jof-07-00079-g001.jpg'dir.

          Şekil 1
          Enfeksiyon sürecinde Candida albicans'ın morfolojik anahtarları ve geçişleri . Blastospordan psödohifa ve hiflere morfolojik geçişler tersine çevrilebilir.

          Uzatılmış maya hücrelerinin zincirleri psödohifleri karakterize eder ve hiflerin şekli, septasyon bölgelerinde daralma olmaksızın dallanmış tübüler hücre zincirleri ile karakterize edilir [7 ] . Filamentasyon, 37 °C'den yüksek bir sıcaklık, bir alkali pH, serum ve yüksek konsantrasyonlarda CO 2 [ 8 ] ile güçlendirilir . Aynı şekilde, N-asetilglukosamin (GlcNAc) [ 7 ] mevcudiyetinde nitrojen ve karbon eksikliği ile de artar . Bir blastospordan hifaya bu geçiş, birçok transkripsiyon faktörünü içeren karmaşık bir düzenleyici sinyal yolları ağının aktivasyonu ile karakterize edilir [ 8]. Maya ve hif bileşimi arasındaki temel fark, hif duvarının mayadan biraz daha fazla kitin içeriğine sahip olmasıdır [ 9 ].

          Hücre duvarı glukan, kitin ve proteinden yapılmıştır. Rolü, hücreyi ortamdaki ozmotik değişiklikler, dehidrasyon ve sıcaklık değişiklikleri gibi stresli koşullardan korumak ve hücreleri konağın bağışıklık savunmasından korumaktır [ 10 , 11 ]. Als1-7, Als9 ve Hwp1 [ 12 ] gibi adezyon proteinleri ile konakçı hücreye adezyondan da sorumludur .

          Hücrenin dış ortamla iletişimi hücre zarı aracılığıyla gerçekleşir [ 13 ]. Hücre zarındaki steroller, hücreye stabilite, sağlamlık ve fiziksel stres faktörlerine karşı direnç kazandırarak son derece önemlidir [ 9 ]. Ergosterol en çok temsil edilen steroldür ve mantarların hücre zarı için karakteristiktir. Endoplazmik retikulum ve lipid cisimciklerinde sentezlenir [ 14 ]. Hücre zarında, reseptör rolüne sahip proteinler içeren bir fosfolipid çift tabakası vardır, ancak bazılarının rolü taşıma ve aynı zamanda sinyal iletimidir [ 15 ].

          Candida albicans , metabolizmasında karbon kaynağı olarak glukozu ve nitrojen kaynağı olarak amino asitleri kullanır [ 16 ].

          Git: 2. Candida albicans'ın Virülans Faktörleri


          Candida , virülans faktörleri sayesinde enfeksiyonun oluşumu ve ilerlemesinin patofizyolojisine aktif olarak katılır. Bir grup virülans faktörü, kolonizasyonun gerçekleşmesine veya bir enfeksiyonun başlamasına neden olurken, diğer grup enfeksiyonun yayılmasına yardımcı olur [ 17 ].

          Polimorfizm, C. albicans'ın komensal bir formdan, bulunduğu ortamdaki değişikliklere bağlı olarak patolojik bir forma geçişini ifade eder . Blastosporların hiflere morfolojik geçişi ve psödohifalar arasındaki geçiş formu ile karakterize edilir [ 18 , 19 ]. Eşeysiz sporlar, klamidosporlar, olumsuz koşullar altında oluşur ve blastosporlardan üç ila dört kat daha büyüktür [ 12 ]. C. albicans'ın morfolojik geçişi, blastosporların tomurcuklanması ve yeni hücrelerin oluşumu ile başlar. Çekirdekler, septum yoluyla anne-kız hücre birleşim noktasında ayrılır [ 20]. Hif formlarının çekirdekleri germ tüpünde ancak septum bölgesinin dışında bölünür. Bölünmeden sonra çekirdeklerden biri ana hücreye geri döner, diğeri germ tüpünün merkezine doğru hareket eder [ 21 ]. C. albicans, insan mikrobiyomunda maya formunda bulunur. Mayadan hif formuna geçiş, patojenik bir forma geçiştir [ 22 , 23 ]. Hifal formu invazivdir ve bu formda hücreler aktif penetrasyon ve indüklenmiş endositoz yoluyla konakçı dokuya girer [ 24 ] (şekil 2). Uyarılmış endositoz, hif invazyonu tarafından aracılık edilir ve konak aktivitesine bağlıdır, oysa aktif penetrasyon, mantar aktivitesine bağlıdır [ 25 ]. Birkaç sinyal yolu hifal oluşumunda yer alır. En önemlisi cAMP'ye bağlı protein kinaz A'dır (siklik adenozin monofosfat PKA) [ 3 , 26 ].

          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı jof-07-00079-g002.jpg'dir.

          şekil 2
          C. albicans'ın ( A ) yapışma ve kolonizasyonunun ve ( B ) penetrasyon ve istilasının şematik sunumu .

          Hifaya özgü bir toksin olan candidalysin'in kandidiyaz oluşumu için çok önemli olduğu gösterilmiştir [ 19 , 27 ]. Candidalysin, sitolitik 31-amino asitli a-sarmal amfipatik bir peptittir [ 19 , 28 ]. C. albicans hifleri tarafından üretilir ve konakçı hücrelere zarar vermede çok önemlidir. Sistemik enfeksiyon ve mortalite oluşumuna katkıda bulunduğu düşünülmektedir [ 29 ]. Kandidalizin interkalasyon, permeabilizasyon ve gözenekler oluşturarak sitoplazmik içeriğin zayıflamasına neden olarak epitelyal membrana doğrudan zarar verebilir [ 29 , 30 ].

          Candida albicans'ın patojenik potansiyeline katkıda bulunan faktörler, adezyon ve istila için önemli olan proteinlerin ifadesidir. Adezyon süreci, hücre duvarındaki protein türleri ve hücre yüzeyinin fiziksel ve kimyasal özellikleri gibi çeşitli faktörlerden etkilenir. C. albicans'ın adezinleri , proteinler, fibrinojenler ve fibronektinler gibi ligandları tanır ve bunlara bağlanır [ 17 ]. Als3 ve Hwp1 gibi adezinler esas olarak hif oluşumu sırasında eksprese edildiğinden, C. albicans'ın konakçı hücrelere yapışmasında önemli bir rol oynarlar [ 17 ].

          Biyofilm oluşumu, C. albicans patogenezinin bir özelliğidir . C. albicans'ın neden olduğu enfeksiyonların çoğu, konağın yüzeyinde veya abiyotik yüzeylerde (implantlar) bir biyofilm oluşumuyla ilişkilidir, bu da yüksek morbidite ve mortaliteye yol açar [ 23 ]. C. albicans morfolojik olarak mayadan hifaya geçebildiği için , biyofilmi farklı morfolojik formlardan oluşan karmaşık bir yapıdır [ 31 ]. Biyofilm birkaç ardışık aşamadan geçerek gelişir [ 32 ]. İlk aşamada, Candida albicans'ın tek tek hücreleribiyofilmin baz tabakasını oluşturan substrata yapışır. Bundan sonra, hücrelerin ipliksi hifal formlara dönüşmeye devam eden uzun çıkıntılar oluşturduğu hücre çoğalması ve iplikleşme aşaması gelir. Hif üretimi, biyofilm oluşumunun başladığının bir işaretidir. Olgunlaşma aşamasında, bunu hücre dışı bir polisakarit matrisinin birikimi takip eder. Son aşama, yeni biyofilmlerin başlama olasılığı ile sonuçlanan, yapışkan olmayan hücrelerin dağılmasını içerir.Figür 3) ve dokuda yayılma olasılığı [ 33 , 34 ].

          İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı jof-07-00079-g003.jpg'dir.

          Figür 3
          C. albicans biyofilm oluşumunun aşamaları . Oluşum, maya hücrelerinin (yeşil) yüzeye (gri) tutunması ile başlar. Biyofilmin erken evresinde C. albicans'ın çoğalması ve hiphal hücrelerinin oluşumu meydana gelir. Bunu hücre dışı matrisin üretimi takip eder. Olgunlaşma aşaması, hücre dışı bir matrisin birikmesini içerir. Son olarak, maya hücreleri yeni bir bölgeye dağılır ve yeni bir biyofilm oluşturur.

          Hücre dışı polisakarit matrisi, biyofilm yapısının korunmasında yer alan hücre dışı polimerleri ve hücre dışı DNA'yı içerir [ 35 ]. Ek olarak, hücre dışı DNA, biyofilmin substrata bağlanmasında hayati bir rol oynar [ 32 ]. Hücre dışı matrisin önemli bir parçası, hedef hücrelerle teması önledikleri için biyofilmin antifungal ilaçlara karşı direncine önemli ölçüde katkıda bulunan β-1,3-glukanlardır [36 ] . Biyofilmdeki C. albicans hücreleri, planktonik hücrelerden daha fazla β-1,3-glukanı ekstraselüler matrikse salar [ 37 ]. Biyofilm kanalları, hücreye yeni "çok hücreli" özellikler kazandırarak besinler, hava ve su ile beslenmesini kolaylaştırır [ 32]. Hücreler arası iletişim veya çekirdek algılama, biyofilm oluşumunda temel bir faktördür ve mikroorganizmaların davranışına ve sinyal moleküllerinin sentezine dayanır [ 38 ]. "Otoindükleyiciler", popülasyon yoğunluğunu bir sinyal mekanizmasıyla düzenleyen sinyal molekülleridir. Sinyal moleküllerinin reseptörlere bağlanması, kritik bir otoindükleyici konsantrasyonunda belirli bir biyofilm yoğunluğuna ulaşıldığında hedef genleri baskılar. Çekirdek algılama sürecinin bu modülasyonu, biyofilm mantar kolonisinin optimal boyutunu korur ve öldürücü fenotipleri kodlar [ 32 ]. Biyofilm oluşumunu düzenleyen transkripsiyon ağı, 1000 genin ekspresyonunu düzenleyen altı ana transkripsiyon regülatöründen (Efg1, Tec1, Bcr1, Ndt80, Rob1 ve Brg1) oluşur [ 39 ,40 ]. Ana hedefi Hwp1 (Hypal Wall Protein) olan Bcr1 transkripsiyon faktörü (Biyofilm ve Hücre duvarı Düzenleyici 1), mukozal yüzeylerde biyofilm oluşturmak için gereklidir [ 41 ]. Hwp1 proteini, mukozal yüzeyler üzerindeki biyofilmlerdeki konak hücreler üzerindeki transglutaminazlara bağlanır. Abiyotik yüzeylerde iken, konağın bağımsız bir enzimi olarak ifade edilir ve bir yapışma işlevine sahiptir [ 42 ]. Birkaç farklı gen ürünü, abiyotik yüzeyler transkripsiyon faktörleri (Efg1, Bcr1, Tye7), hücre duvarı proteinleri (Hwp1, Als3), protein kinazlar (Ire1, Cbk1) üzerindeki biyofilm gelişimini kontrol eder [ 43]. Abiyotik yüzeylerde biyofilmin iki temel düzenleyicisi Efg1 ve Bcr1'dir. Bu transkripsiyon faktörleri, abiyotik yüzeylerdeki biyofilmlerde hücre adezyonu ve filamentasyonu için farklı genlerin ekspresyonu için gereklidir. Ek olarak, Bcr1'in hedefi olan adezin Als3, abiyotik yüzeyde biyofilm oluşumunda çok önemli bir rol oynar [ 43 ]. Bir biyofilmin oluşumu sırasında, oluşumunda doğrudan yer alan genlerin ifadesindeki değişimin yanı sıra, biyofilmin farklı özellikleriyle dolaylı olarak ilişkili olan genlerin ifadesi de değişir [44] .]. Biyofilmin daha derin katmanlarındaki hücrelerin karakteristiği olan, kükürt içeren amino asitlerin metabolizmasında yer alan genlerin ifadesi artar. Bu metabolizma, hücrelerin açlıktan ve oksidatif stresten kurtulmasını sağlar çünkü kükürt amino asitleri antioksidanların sentezinde yer alır. Biyofilm hücreleri hipoksik bir ortam oluşturur ve glikoliz, yağ asidi metabolizması ve ergosterol sentezi ile ilgili genlerin ekspresyonunu arttırır [ 45 ].

          C. albicans hiflerinin tigmotropizmi, kalsiyum kanallarından hücre dışı kalsiyum alımı ile düzenlenir. Candida türlerinin virülansının arttırılmasında önemli bir mekanizmadır . Tigmotropizm, abiyotik yüzeylerde bir biyofilm oluşturmaya ve konakçı dokuda yayılmaya yardımcı olur [ 16 ].

          C. albicans'ın virülans faktörleri arasında beyaz ve opak hücreler arasındaki fenotip geçişi yer alır. Fenotip çeşitliliği, ortamdaki değişikliklere hızlı bir yanıt sağlar. Birçok mikrop türünün yaşamı için son derece önemlidir. Candida albicans hücrelerinde , beyaz ve opak olmak üzere iki fenotip durumu arasında geçiş, ipliksi büyümede farklılıklara ve in vitro immünolojik hücrelerle etkileşimlere yol açar [ 46 ]. Morfolojik değişiklikler ve fenotipik geçişler, transkripsiyonel olarak stabilize edilir ve birçok nesil boyunca stabildir [ 47 ].

          Candida albicans'ta hidrolitik enzimlerin salgılanması mevcuttur . Hidrolitik enzimler, konak dokuya bağlanma ve konak hücre zarının yırtılmasına neden olma gibi kommensal ve patojenik özellikleri kolaylaştırır. Bu enzimler nedeniyle, mukoza zarının ve kan damarlarının yüzeylerine invazyon mümkündür ve ayrıca konağın bağışıklık tepkisinden kaçınmaya da katılırlar. C. albicans tarafından üretilen üç ana enzim, SAP (salgılanan aspartil proteaz), fosfolipaz ve hemolizindir [ 48 ].

          Git: 3. Kandidiyazın Klinik Belirtileri


          Candida albicans, bireylerin yaklaşık %50'sinde normal mikrobiyotanın bir parçasıdır [ 49 ]. Candida sp . enfeksiyonların, yüzeysel mukokutanöz bozukluklardan çok sayıda organı etkileyen invaziv bir enfeksiyona kadar çeşitli klinik belirtileri vardır [ 50 ]. Burada C. albicans'ın ağız boşluğu, bağırsak mukozası, cilt ve invaziv enfeksiyonlardaki klinik belirtilerini sunuyoruz . 3.1. Ağız Boşluğunda Candida albicans


          Kandidoz veya kandidiyaz, ağız boşluğunda en sık görülen mantar enfeksiyonudur ve Candida türlerinin neden olduğu bir hastalıktır. Daha önce nüfusun %35-80'inin oral Candida taşıyıcısı olduğu düşünülüyordu . Moleküler tespit yöntemlerini kullanan son araştırmalar, Candida spp. tüm insanlarda normal oral floranın bir parçası olarak bulunurlar [ 51 , 52 ]. Enfekte ve sağlıklı ağızlarda en yaygın tür Candida albicans'tır ve oral mantar izolatlarının %80'inden fazlasında bulunduğu tahmin edilmektedir. Albicans olmayan Candida türleri olarak adlandırılan ve ağızda bulunan diğer Candida türleri C. glabrata ,C. dubliniensis , C. parapsilosis , C. krusei ve C. tropicalis [ 51 , 53 , 54 , 55 ].

          Çeşitli sistemik, yerel, kalıtsal ve çevresel faktörler oral homeostazın bozulmasına neden olur. Sonuç olarak, normal floranın patojene geçişi ve fırsatçı bir enfeksiyon meydana gelir. Değişiklikler ya aşırı Candida büyümesine ya da onun virülans faktörlerinin ifadesinde bir değişikliğe yol açar [ 51,56]. Kandidoz için en yaygın lokal predispozan faktörler, zayıf ağız hijyeni, hareketli protez replasmanları, ortodontik aparatlar ve tıkayıcılar, ağız kuruluğu (kserostomi), sigara ve steroid inhaler kullanımı, karbonhidrat açısından zengin bir diyet ve oral mukoza hastalıklarıdır. Tarif edilen sistemik predispozan faktörler yaş (risk grupları yaşlılar ve yenidoğanlardır), gebelik, antibiyotik tedavisi, sistemik kortikosteroid tedavisi, tümörler ve tedavileri gibi hastalıklar, besinsel eksiklikler, beslenme sistemi, beslenme, folik asit ve vitamin eksikliği), endokrinopati (diyabet, narsoid, vcreym, vcreym, vb.), Jögren sendromu, vb.), HIV ve birincil immün yetmezlikler [57 , 58 , 59 ] .

          HIV enfeksiyonu/AIDS'te kandidoz, immün yetmezliğin erken bir belirtisidir ve bu tür hastalarda immün durumu ve hastalık progresyonunu gösterebilir [ 59 , 60 ].

          Oral kandidoz çok çeşitli klinik belirtilere sahiptir. Bu nedenle, enfeksiyonun sadece ağız boşluğunu ve perioral alanı etkilemesi durumunda birincil kandidoz ve enfeksiyonun sistemik hastalığın bir parçası olarak ortaya çıkması durumunda ikincil kandidoz olarak bir bölünme vardır. Mukoza zaten değişmiştir ve enfeksiyon ve Candida türleri ile ilişkili lezyonlar için uygundur. mantarlar. Renk değişikliğini içeren klinik özelliklerine göre kandidoz sıklıkla beyaz ve kırmızı olarak ayrılır [ 57 , 61 ]. Birincil form dört farklı durumu içerir: psödomembranöz kandidoz, akut eritematöz kandidoz, kronik eritematöz kandidoz ve kronik hiperplastik veya nodüler kandidoz [ 51 ].

          Psödomembranöz kandidoz en sık görülen formdur ve mukozal epitelyumun sadece üst tabakası enfekte olduğundan, nazik kazıma ile kolayca ayrılabilen oral mukoza üzerinde beyaz yamalar veya plaklar ile karakterize edilir. Çıkarma olasılığı, bu kandidoz formunu ağızdaki diğer beyaz birikimlerden ayıran, kabul edilen bir ayırıcı tanısal özelliktir. Tipik olarak yenidoğanlarda (doğum kanalı yoluyla enfekte olma olasılığı yüksek olanlarda), anemik ve immün yetmezlikli bireylerde (HIV, diyabet, malignite), topikal steroid tedavisi gören hastalarda ve kserostomisi olanlarda görülür. Lezyonlar lokalize ve jeneralize olabilir ve en sık dil, yanak mukozası, yumuşak ve sert damak etkilenir. Genellikle tat alma bozuklukları ve ağızda kötü bir tat eşlik eder [ 51 ,57 , 61 , 62 ].

          Akut eritematöz veya atrofik kandidoz, geniş spektrumlu antibiyotikler ve immünosupresanlar ve kortikosteroidlerle sistemik tedavinin bir yan etkisi olarak ortaya çıkar ve sonuç olarak ağız boşluğu florasını değiştirir. Klinik olarak dil sırtında ağrılı kırmızı bir lezyon olarak kendini gösterir ve dilin depapilasyonu sıklıkla yanma ve tat değişiklikleri semptomlarıyla birlikte bulunur [ 51 , 57 , 61 ].

          Kronik eritematöz veya atrofik kandidoz, protez stomatiti veya protez palatit olarak da bilinir. Hareketli akrilik protez takan hastalar için tipiktir ve en yaygın olarak tam protezli kişilerde damakta bulunur. Hastalığın başlangıcı, kötü ağız hijyeni ve takma dişlerin yetersiz hijyeni ile kolaylaştırılır. Mukozadaki lezyonlar kırmızıdır ve protezin kapladığı alanlarla sınırlıdır, bazen yanma hissi eşlik eder, ancak sıklıkla asemptomatiktir ve yalnızca diş muayenesi ile saptanır [51 , 57 , 61 , 63 , 64 ] .

          Kronik hiperplastik kandidoz, Candida lökoplaki olarak da adlandırılır . Psödomembranöz formun aksine, bu beyaz birikintiler hafif kazıma ile giderilemez. Mantarın hifleri tarafından ağız boşluğu dokusunun derin infiltrasyonu ile karakterizedir. En sık dilin yan kısımlarında ve yanak mukozasında bulunur. Kümeler homojen veya heterojen olabilir. Heterojen lezyonlar kanser öncesi durumlardır, çünkü bunlar malign transformasyon için predispozan bir faktördür [ 51 , 61 ].

          Candida ile ilişkili hastalıkların ikincil ve diğer formları arasında , açısal keilit, medyan rhomboid glossit ve kronik mukokutanöz kandidiyazdan bahsetmek önemlidir [ 51 , 61 ].

          Açısal keilit, çoğunlukla anatomik yatkınlık, kserostomi, immünsupresyon, protez değişimlerinin neden olduğu stomatiti içeren ve ağızda mevcut kandidiyazis ile ilişkili olabilir veya olmayabilir, birçok etiyolojiye sahip bir hastalıktır. Dudakların bir veya daha sıklıkla her iki köşesinin enflamatuar bir durumudur ve klinik olarak bazen beyaz plakla kaplanan kızarıklık, erozyon ve kabuklarla kendini gösterir [61 , 63 ] .

          Medyan rhomboid glossit, genellikle sekonder Candida enfeksiyonu ile ilişkili, bilinmeyen bir etiyoloji durumudur . Değişiklik dilin ortasında yer alır, klinik olarak nodüler veya pürüzsüz bir lezyon olarak kendini gösterir ve asemptomatiktir [ 51 ].

          Kronik mukokutanöz kandidiyazis (CMC), kandidial enfeksiyonlarla savaşma yetersizliğini yansıtan heterojen bir koşullar grubudur. Deride, tırnaklarda ve mukozada tekrarlayan, ilerleyici kandidiyazis olarak ortaya çıkar [ 65 ]. Oral kavite değişiklikleri başlangıçta psödomembranöz kandidoza benzerken daha sonra hiperplastik bir forma dönüşür. En yaygın olarak çocuklukta ortaya çıkar ve çok sayıda immün bozuklukla ilişkilidir [ 66 ]. C. albicans'a karşı savunma, hem doğal hem de adaptif konakçı bağışıklık sistemleri tarafından sağlanır [ 67 , 68 ]. Araştırma çalışmaları, özellikle CMC hastaları, C. albicans sırasında birincil doğal ve evlat edinen bağışıklık tepkisinin geliştiği açıklanmış mekanizmalara sahiptir.enfeksiyon. Duyarlılık faktörlerinin gastrointestinal/vulvovajinal kandidiyazis ve CMC enfeksiyonları arasında önemli ölçüde farklılık gösterdiği de bulunmuştur. İlki, yerel besinler, pH, safra asitleri ve yerel kommensal flora gibi mikro-çevresel faktörlere çok daha bağımlıdır. Aynı zamanda, CMC hastalarının genomik dizilimi, daha spesifik olarak Interleukine-17 (IL-17) yollarında olmak üzere tip 3 bağışıklık kusurlarını ortaya çıkardı [ 69 , 70 , 71 ]. T helper (Th17) hücrelerinin Candida'ya karşı bağışıklık savunmasında kritik bir role sahip olduğu , aynı zamanda diğer mikroplara karşı da önemli bir rolü olduğu keşfedildi [ 72 , 73] .]. Çocukluk çağında başlayan CMC'li hastaların %80'e kadarında , kutanöz dermatofit enfeksiyonları ve ara sıra bakteriyel septisemi dahil olmak üzere, Candida dışındaki organizmalarla tekrarlayan veya ciddi enfeksiyonlar gelişir [ 65,74 ].

          Mukozaya ek olarak, Candida spp . Mine, dentin ve sement gibi tüm diş yüzeylerinde bulunur. C. albicans , mine çatlaklarında ve oluklarında büyür ve açık dentin tübüllerinden geçebilir [ 75 , 76 ]. Birkaç Candida spp. çocuklarda ve yetişkinlerde dentin ve kök çürüklerinden izole edilmiştir, çocuklarda %66-97 ve yetişkinlerde %31-56 prevalansı vardır [ 76 , 77 ]. Streptococcus mutans suşları en yüksek karyojenik potansiyele sahip bakteri olarak kabul edilir ve Candida ile kombinasyon halindedir., bu potansiyel artar. Bakteriyel ve mantar hücreleri, hücre dışı bir polisakarit olarak karyojenik bir biyofilm oluşturmaya yardımcı olan glukan üretebilir [ 76 , 78 ]. Candida türlerinin varlığı . böylece S. mutans'ın büyümesini ve biyofilm hacmini uyarır [ 79 , 80 ]. C. albicans ile periodontitis gelişiminde en önemli olduğu kabul edilen bir bakteri olan Porphyromonas gingivalis arasında etkileşim olduğuna dair kanıtlar vardır [ 81 , 82 ]. Bir biyofilm modelinde, oksijen varlığında C. albicans'ınP. gingivalis için koruyucu bir ortam oluşturur [ 81 , 83 ]. Sonuç olarak, Candida oral enfeksiyonlarda önemli bir rol oynamaktadır.

          C. albicans'ın neden olduğu hafif ila orta şiddette oral enfeksiyonların tedavisi genellikle 7 ila 14 gün boyunca ağız boşluğunun içine topikal olarak uygulanan antifungal ilaçlardan oluşur. Bunlar antifungal ilaçlar olan klotrimazol, mikonazol veya nistatindir. Şiddetli enfeksiyonlar için, oral veya intravenöz olarak alınan antifungal ilaç flukonazol en yaygın şekilde kullanılır [ 84 ]. 3.2. Gastroenterolojide Candida albicans


          Gastrointestinal flora her bireyde benzersizdir ve sağlıklı insanlarda çoğunlukla sabittir. Sindirim sistemi boyunca bileşiminde farklılıklar vardır ve beslenme veya hijyen alışkanlıklarına ve yaşa bağlı olarak kişiden kişiye değişir [ 4 , 85 , 86 , 87 ]. İnsanların doğası gereği C. albicans taşıyıcısı olduğu ve gastrointestinal sistemin vücuttaki ana stoklardan biri olduğu düşünülmektedir . Bu tür, mantarlar arasında en yaygın fırsatçı patojendir ve yüzeyselden invaziv ve hayatı tehdit eden enfeksiyonlara kadar çeşitli hastalıklara neden olabilir [ 88 ]. C. albicans'ın girişikan dolaşımına karışması ve dissemine kandidiyaz gelişimi çoğunlukla gastrointestinal sistemin invaziv bir enfeksiyonundan sonra ortaya çıkar [ 4 , 89 , 90 ]. C. albicans'ın kommensal veya simbiyotik bir organizmadan patojenik bir organizmaya geçişini teşvik eden ana risk faktörleri, yerleşik mikrobiyotanın disbiyozu, immün disfonksiyon ve muko-intestinal bariyerin hasar görmesidir [ 91 ].

          Yaygın kandidoz için dört olaydan en az biri gereklidir: epitel hücrelerinin (EC'ler) kan kılcal damarlarına ve damarlarına doğrudan invazyonu, konakçı immün hücreler tarafından fagosite edilen C. albicans hücrelerinin indirekt translokasyonu, mukozal bariyerlerin doğrudan hasarı ve mantar biyofilmlerinden yayılma [ 49 , 91 ].

          Mantarların neden olduğu en yaygın enfeksiyöz özofajit tipi, C. albicans'ın neden olduğu özofageal kandidozdur [ 92 , 93 ]. Bağışıklığı baskılanmış kişilerde (HIV/AIDS-özofajit C. albicans'ın neden olduğu HIV/AIDS-özofajit, AIDS'i tanımlayan bir hastalıktır, hematolojik maligniteler, nakil hastaları) ve diyabet, alkol tüketimi ve sigara, antibiyotik tedavisi, glukokortikoidler, kemoterapi, radyoterapi, üst özofagus hasarı ve yaşlılık gibi komorbiditesi olan hastalarda enfeksiyon riski mevcuttur [92 , 93 , 94 , 95 , 96 ] .]. Klinik hastalık asemptomatik olabilir ancak en yaygın olarak akut odinofaji, disfaji ve sternumun arkasındaki ağrı ile kendini gösterir [ 94 , 97 ]. Endoskoplar, mukoza üzerinde yıkanamayan beyaz ila açık sarı renkli plaklar gösterir ve çıkarıldıktan sonra mukoza kırmızı ve ülseratiftir [ 93 , 94 ]. Özofagus kandidoz, orofaringealden farklı olarak, topikal antifungaller yerine her zaman sistemik antifungallerle tedavi edilmelidir. Tedavide üç ilaç grubu kullanılabilir: nistatin, amfoterisin B ve azol antifungaller (en yaygın olarak flukonazol), burada seçim immünsüpresyonun derecesine bağlıdır [ 93 , 98 ]. C. albicans'ın neden olduğu özofajitçoğunlukla yüzeyseldir, ancak hematojen yayılım (fungemi) ile komplikasyonlar ve invazyon da mümkündür ve daha sonra diğer organların enfeksiyonuna yol açabilir [ 93 ].

          Gastroduodenumun mantar hastalıkları daha az yaygın olarak bildirilmektedir. Çoğunlukla bu bölgede tümörü olan kişilerde sekonder enfeksiyon olarak ortaya çıkarlar ve iyileşme yeteneği azalmış iyi huylu veya kötü huylu ülserleri infiltre ederler. Endoskopik olarak bu, mukozadan kolayca ayrılan ve ülserin tabanında yer alan beyaz veya grimsi bir birikintiye benzer. Ülser çoğunlukla antiülser tedavi ile iyileşir [ 99 ].

          Muhtemel bağırsak enfeksiyonu, invazyonun mukoza ve submukoza ile sınırlı olduğu durumlarda yüzeysel olabileceği gibi, penetrasyonun sınırsız olduğu ve bağırsak duvarında doku yıkımı ve perforasyonu veya uzak yerlere yayılımın olduğu durumlarda derin de olabilir. Mantar enfeksiyonları en yaygın olarak inflamatuar barsak hastalığı (IBD) ile ilişkilidir. Predispozan faktörler, çoğunlukla cerrahi ve kemoterapinin neden olduğu mukozal hasar ve tümör tedavisi veya uzun süreli glukokortikoid kullanımına bağlı bozulmuş nötrofil fonksiyonudur. TNFa uygulanırken, IBD tedavisi sırasında enfeksiyonlar erken saptanırsa, C. albicans'tan şüphelenilmelidir [ 100 ].

          Bir patojen olarak C. albicans'ın bağırsak mukozası ile etkileşimi adezyon, invazyon, hasar ve apoptoz şeklinde gerçekleşir. Enfeksiyonda ve dolayısıyla patojenitede ana rol, mantar hifleri tarafından salgılanan maddeler tarafından oynanır [ 89 , 91 , 101 ].

          Artan kolonizasyon ve enfeksiyon, konakçı hücreler tarafından antimikrobiyal peptitlerin (AMP'ler) salgılanmasını arttırır, ancak C. albicans, bağırsak epitel hücrelerine (IEC) yapışmanın ilk adımı olarak aktivitelerinden kaçınmak için mekanizmalar geliştirmiştir. AMP'lere karşı savunmaya ek olarak, C. albicansepitel hücre tabakasına ulaşmak için mukusun koruyucu tabakasını yıkmak zorundadır. Müsinlere yapıştıktan sonra müsinolitik enzimler salgılar. IEC ile ilk temastan sonra, çoğu mantar hücresi hif formuna dönüşür ve adezinler ve hif istilaları salarak adezyonu destekleyen genleri eksprese eder. Yüzey moleküllerinin, yani adezinlerin salınması, konakçı dokuya yapışma sürecinde çok önemlidir. Ayrıca hücre duvarı yüzeyindeki polisakkarit molekülleri aracılığıyla enterositlere yapışabilir [ 4 , 102 , 103 , 104 ].

          C. albicans tarafından istila , endositoz ve aktif penetrasyon olmak üzere iki mekanizma yoluyla gerçekleşir. Endositoz, sürdürülebilir hif gerektirmeyen ve etkileşimin ilk dört saatinde meydana gelen konakçı tarafından yönlendirilen bir süreçtir. IEC'ye aktif penetrasyon, mantarın sürdürülebilir formlarını gerektiren ancak konak aktivitesi gerektirmeyen ve epitel hücrelerinin tipine bağlı olan bir prosedürdür. Penetrasyonun, hifanın progresif uzaması ve litik aktivite tarafından yaratılan mekanik basınç kombinasyonu ile gerçekleştiği düşünülmektedir. Bu prosedür, C. albicans'ın hücreler arası bağlantılar bozulmadan kalırken enterositlere girmesine izin verir. Oral hücrelerin aksine, mantarlar enterositleri istila etmek için spesifik genlere ihtiyaç duyar [ 4 , 91 ].

          C. albicans mantarlarının istilası, IEC hasarına ve hücre ölümüne katkıda bulunur. Nekrotik hücre ölümünün, C. albicans'ın enterositlerden translokasyonu sırasında gözlenen ana hasar mekanizması olduğu varsayılmaktadır . Hif oluşumundan sonra, konakçı hücrelere zarar vermekten sorumlu olan kandidalizin adı verilen sitolitik bir toksin salgılanır. İnsan mantar patojenlerinde tanımlanan ilk peptit toksinidir [ 4 ].

          Antifungal tedavi, karın içi enfeksiyonu olan ve yakın zamanda karın ameliyatı, nekrotizan pankreatit veya anastomoz kaçağı gibi kandidiyaz için risk faktörleri olan hastalarda kullanılmalıdır. Ek olarak, enfeksiyon kaynağı kontrolü dahil edilmelidir. Antifungal tedavi seçimi, kandidemi tedavisine benzer. İlk tedavi olarak bir ekinokandin önerilirken, flukonazol alternatif bir tedavidir. Azoller, enfeksiyona bunlara dirençli Candida türlerinin neden olmadığı durumlarda kullanılır [ 105 ]. 3.3. Dermatovenerolojide Candida albicans


          Candida spp. enfeksiyonlar dermatolojide en sık görülen mantar enfeksiyonlarından biridir. Candida albicans, enfeksiyonların %80-90'ından sorumludur, ancak diğer Candida türleri sıklıkla nedensel patojenler olarak görülür [ 74 ]. Candida albicans normalde kommensal bir mantar olduğundan, Candida enfeksiyonları vakaların çoğunda fırsatçı olarak kabul edilir . Bununla birlikte, çeşitli olası nedenlerle konak bağışıklığı bozulduğunda, patojenik bir enfeksiyon ortaya çıkabilir [ 67 ]. Genel olarak, konukçu savunma sistemi ile Candida albicans'ın virülans faktörleri arasındaki denge , kommensal ilişkinin anahtarıdır. Candida albicansgenellikle yüzeysel deri enfeksiyonlarına neden olurken, Candida'ya bağlı olarak dermis ve deri altı tutulumu olan “derin” mikozlar nadirdir. Bununla birlikte, ciddi şekilde bağışıklığı baskılanmış hastalarda, genellikle ölümcül bir sonuçla birlikte derin penetrasyon ve sistemik kandidiyazis ile sonuçlanan invaziv bir mantar enfeksiyonu meydana gelebilir.

          Mukokutanöz kandidiyaz geniş bir klinik tablo yelpazesine sahiptir. Etkilenen vücut bölgesine, hastanın yaş grubuna ve çeşitli predispozan faktörlere bağlıdır. Kandidiyazisin klinik olarak ilgili birleştirici özellikleri eritem, erozyonlar ve kolaylıkla çıkarılabilen sevimsiz beyaz plaklardır. Beyaz plaklar ciltten çok mukozada görülürken, eritem ve erozyonlar yaygın olarak spesifik olmayan sunumlardır. Bu nedenle, hastanın potansiyel predispozan faktörlerine özel dikkat göstererek iyi bir anamnez almak, bir dermatoloğun klinik bir kandidiyazis şüphesi oluşturması için çok önemlidir. Tipik vücut bölgeleri etkilendiğinde, bu aynı zamanda başarılı bir teşhis için bir ipucudur.

          En yaygın tutulum bölgeleri, aşırı kilolu hastalarda meme altı, kasık kıvrımları, intergluteal kıvrımlar ve pannus kıvrımları gibi intertriginöz bölgelerdir. Candida enfeksiyonları, keskin bir şekilde belirgin eritematöz, bazen yüzeyde hafif pullu eroziv yamalar ve periferde uydu papüller ve püstüller ile mevcuttur [ 106 ]. Bu püstüller genellikle sterildir ve epidermiste nötrofil koleksiyonlarından dolayı süngerimsi püstüller olarak adlandırılır [ 74 ].

          Candida ayrıca kronik ve akut paronişi ve onikomikoza neden olabilir. Paronişi, beyazlık olarak da adlandırılan tırnak çevresindeki (periungual bölge) derinin iltihaplanmasıdır ve genellikle Staphylococcus aureus ve Pseudomonas spp. Onikomikoz bir mantar tırnak enfeksiyonudur ve Candida'nın neden olduğu durumlarda genellikle kronik paronişiye sekonderdir [ 107 ].

          Erosio interdigitalis blastomycetica (EIB), genellikle elleri sık sık suda olan hastalarda, üçüncü ve dördüncü parmaklar arasındaki ağ boşluğunun başka bir yaygın Candida enfeksiyonudur. Bu alanın en azından hareketli olduğu varsayılır, bu nedenle su, ter ve sabun gibi diğer potansiyel tahriş edici maddelerin tutulması büyük olasılıkla Candida enfeksiyonu için mükemmel bir temel oluşturur. Tipik olarak, beyaz yumuşatılmış derinin bir kenarı ile çevrili merkezi bir erozyon vardır [ 108 ].

          Nadir vakalarda, Candida albicans , şiddetli immünsupresyonu olan yetişkin bir erkekte genellikle sakal bölgesinde folikülite neden olabilir. Bu gibi durumlarda, kılların ve püstüllerin çevresinde daha derin nodüllerin klinik bulgusuyla derinin derin katmanlarını içerebilir.

          Erkeklerde ve kadınlarda genital bölge, Candida enfeksiyonunun sık görülen bir bölgesidir. Asemptomatik kadınların yaklaşık %15-30'u Candida spp.'nin vajinal taşıyıcılarıdır ; gebelik sırasında bu oran %40'a yükselir [ 109 ]. Hemen hemen her kadının yaşamı boyunca en az bir kez vulvovajinal kandidiyazis vakası geçirdiği varsayılmaktadır. Erkeklerde balanit ve balanopostit görülür. Her iki cinsiyette de perianal bölgenin tutulumu mümkündür. Deride klinik bulgular olmasa bile, tek başına genital ve perianal bölgenin lokalize kaşıntısı kandidiyaz belirtisi olabilir [ 110 ].

          Candida enfeksiyonunun başka bir sunumu bebek bezi dermatitidir. Bebek bezi dermatiti, bebek bezinin altındaki derinin iltihaplanmasıdır ve genellikle bebeklerde görülür, aynı zamanda idrarını tutamayan yetişkinlerde de görülür. Genellikle bir tahriş edici kontakt dermatit şeklidir, ancak birçok vaka Candida süperenfeksiyonu ile komplike hale gelir. Bebek bezi dermatiti, normal cilt bariyerine zarar veren çeşitli faktörlerin kümülatif sonucudur. İlk başta cilt maserasyonuna yol açan oklüzyon ve cildin idrarla teması öne sürülmüştür, ancak günümüzde fekal bakterilerin ve idrarın alkalin pH'ının daha büyük bir rol oynadığı kabul edilmektedir [74 ] .

          Yeni doğan bebeklerin ciltleri birçok yönden yetişkinlerinkinden farklıdır. Candida'nın yayılmış kutanöz enfeksiyon ve sistemik enfeksiyon üretme olasılığı bu nedenle, özellikle prematüre yenidoğanlarda daha yüksektir [ 111 ]. Konjenital kandidiyazis intrauterin bir enfeksiyonu temsil eder. Geniş eritem alanları, papüller ve püstüller yanı sıra deskuamasyon ve erozyonlarla birlikte yaygın "yanık benzeri" eritem görülebilir [ 112 ]. Neonatal kandidiyazis, doğum sırasında veya doğum sonrası edinilir ve çocuk bezi ve intertriginöz alanlar gibi daha tipik bölgeleri içermesi nedeniyle erişkin sunumuna daha benzerdir [ 113 ].

          Daha önce belirtilen CMC'nin yanı sıra, hiperimmünoglobulin E sendromu (HIES), diğer şeylerin yanı sıra, HIES hastalarının yaklaşık %80'inde meydana gelen, tekrarlayan kutanöz kandidiyazis ile karakterize edilen başka bir kalıtsal hastalık grubudur [114 , 115 ] . STAT3 (sinyal dönüştürücü ve transkripsiyon 3 aktivatörü) kodlayan gendeki mutasyonlar , HIES'in klasik formuna neden olur, bu nedenle Candida enfeksiyonlarına duyarlılık, STAT3'e bağımlı sitokinlerin (örn., IL-23, IL-21, IL-6) IL-17 üreten T yardımcı hücrelerinin farklılaşmasındaki önemli rolünü ortaya çıkarır [116 ] .

          Konak bağışıklık mekanizmalarındaki kalıtsal kusurların yanı sıra, kandidial enfeksiyonlara çok sayıda dış faktör katkıda bulunur. Daha önce de bahsedildiği gibi, diyabetes mellituslu hastalarda [ 117 , 118 , 119 ], HIV/AIDS hastaları gibi bağışıklığı baskılanmış hastalarda, kemoterapi alan onkoloji hastalarında ve geniş spektrumlu sistemik antibiyotikler alan organ nakli hastalarında [ 117 , 120 , 121 ] görülürler [ 122 , 123 ]. Modern tıpta, özellikle ortaya çıkan yeni tedavilerle bu tür hastaların sayısı artmakta, dolayısıyla Candida enfeksiyonları da artmaktadır [ 68] .]. Örneğin, immün aracılı enflamatuar hastalıkların (IMID) tedavisinde dikkate değer gelişmeler yaşanıyor. Önemli spesifik terapötik hedeflerden biri sitokin IL-17'dir, çünkü sedef hastalığı da dahil olmak üzere çeşitli IMID'lerin patogenezinde kritik bir rol oynar [ 124 , 125 , 126 ]. Bu tedavileri alan hastalarla çalışan dermatologlar, onları artan kandidiyazis riski konusunda uyarmalıdır. Daha önce bahsedildiği gibi, IL-17 yolakları, Candida'ya karşı konak savunmasında kritik bir rol oynar , dolayısıyla bunların bloke edilmesi, açık bir şekilde, enfeksiyona karşı daha fazla duyarlılığa yol açacaktır [ 126 , 127 ].

          Kutanöz kandidiyazı tedavi etme stratejisi, enfeksiyonun konumuna, yaygınlığına ve hastanın bağışıklık durumuna bağlıdır. Çoğu genellikle topikal antifungal ajanlara yanıt verir, ancak hastanın bağışıklığı baskılanmışsa, geniş alanları etkilenmişse veya topikal tedaviye yanıt vermiyorsa, sistemik tedavi gerekir [128 ] . Birçok antifungal ajan mevcut olmasına rağmen, hepsi Candida'ya karşı etkili değildir [ 105 ]. Sınırlı etkinlik, tek terapötik zorluk değildir. Günümüzde antifungal ajanlara karşı patojen direnci giderek artmaktadır ve Candida türleri de bunların arasında yer almaktadır [ 67 , 129] .]. Genel olarak, mukokutanöz kandidiyazis topikal azollere (mikonazol, klotrimazol ve ekonazol) iyi yanıt verir [ 74 , 105 , 130 ]. Topikal polienlerden nistatin, özellikle oral ve vulvovajinal kandidiyazis için en yaygın şekilde kullanılır [ 105 , 131 ]. Candida'ya karşı azoller, alilaminler veya benzilaminlerden daha etkili olan bir antifungal ajan, siklopiroks olamindir. Dermatoloji pratiğinde giderek daha fazla kullanılmaktadır [ 132 , 133 ]. Sistemik tedavi gerekliyse, genellikle tercih edilen ilaç flukonazoldür [ 105 ]. Bununla birlikte, son zamanlarda azole dirençli suşlar tespit edilmiştir [ 134]. Alternatif seçenekler, itrakonazol veya mevcut ikinci nesil triazollerden biridir. Hasta azol tedavisine yanıt vermiyorsa amfoterisin B tedavisi denenmelidir. Ekinokandin sınıfı antifungal ilaçların (mikafungin, anidulafungin, kaspofungin asetat) üyeleri de Candida enfeksiyonlarında etkinlik göstermiştir [ 105 , 135 ]. Yakın zamana kadar ketokonazol de yaygın olarak kullanılıyordu, ancak EMA ve FDA potansiyel hepatotoksisite nedeniyle onu geri çekti ve bugün kullanımı sadece komplike, yanıt vermeyen mantar enfeksiyonlarıyla sınırlıdır [136 ] . Halen yerel olarak (şampuan olarak) kullanılmasına rağmen, bazı ülkelerde sistemik kullanımı sınırlıdır.

          Topikal antifungallerin en yaygın yan etkisi lokal cilt tahrişidir, ancak nadiren gerçek alerjik kontakt dermatittir. Sistemik antifungal ilaçlar, toksik epidermal nekroliz ve Stevens-Johnson sendromu dahil olmak üzere ciddi kutanöz reaksiyonlara neden olabilir. Flukonazol potansiyel hepatik hasara neden olabilir. Hepatotoksisitenin ana mekanizması, lipofilik ilaçların metabolizmasında önemli rol oynayan sitokrom P450 enzimlerinin inhibisyonunun neden olduğu ilaç-ilaç etkileşimleridir. Böbrek veya karaciğer hastalığı olan hastalarda tüm sistemik antifungaller dikkatle kullanılmalıdır [ 137 ].

          Sonuç olarak, kutanöz kandidiyazis tedavisinde ek olarak kullanılan geleneksel topikal ilaçlardan bahsetmeye değer: potasyum permanganat (KMnO 4 ), yılan otu solüsyonu, Burow solüsyonu (alüminyum asetat) [ 74 ]. Ek olarak, yeni antifungal preparatlar arayışında gümüş kullanımı yeniden ortaya çıkmıştır [ 138 ]. Son zamanlarda, gümüş nanopartiküllerin (AgNP'ler) Candida spp dahil olmak üzere çeşitli dermatofitler ve mayalar üzerindeki etkisi . test edildi ve birçok çalışma, AgNP'lerin kandidiyaz tedavisinde potansiyele sahip olduğunu gösterdi [ 139 , 140 ]. 3.4. İnvaziv Candida albicans Enfeksiyonları


          İnvaziv kandidiyazis, Candida spp.'nin neden olduğu kan dolaşımı enfeksiyonlarını ifade eder . Çoğu zaman bağırsak bariyerini geçtikten sonra ortaya çıkar. Örneğin, ameliyattan sonra karın boşluğuna yayılabilir ve kan dolaşımına girerek kandidiyazise neden olabilir [ 141 ]. C. albicans'ın aşırı çoğalması, çeşitli organlarda fırsatçı enfeksiyonlara, yani invaziv kandidiyaza yol açarak, bağışıklık tepkisinde bir bozulmayı tetikleyebilir [ 142 ]. Bu nedenle, invaziv hastalık genellikle artan veya anormal kolonizasyonun yanı sıra lokal veya jeneralize konakçı savunma eksikliğinin sonucudur [ 143] .]. İnvaziv kandidiyazis tek bir klinik antite olmayıp herhangi bir organı potansiyel olarak etkileyebilen sayısız klinik bulgusu olan bir hastalıktır [ 141 ] (tablo 1). İnvaziv kandidiyazis, tıbbi teknoloji gelişimi ile yakından ilişkilidir ve sağlık hizmetleri ortamında önemli bir morbidite ve mortalite nedeni olarak geniş çapta tanınmaktadır [ 144 ]. En az 15 farklı Candida spp. insanlarda enfeksiyonlara neden olabilir. Bununla birlikte, beş patojen en invaziv enfeksiyonlara neden olur: Candida albicans , Candida glabrata , Candida tropicalis , Candida parapsilosis ve Candida krusei , ancak klinik ortamda en yaygın patojen C. albicans'tır [ 141 ]. tablo 1


          Çeşitli organlarda invaziv kandidiyaz.
          osteomiyelit beyin apsesi koroidit Endokardit kandidüri Kronik yayılmış kandidiyazis odak apsesi
          spondilodiskit Meningo-ensefalit retinit Piyelonefrit odak apsesi
          endoftalmi Pyonefroz
          böbrek apsesi
          Ayrı bir pencerede aç
          İnvaziv Candida enfeksiyonları en sık kandidemi ( kandaki Candida türleri) ile ilişkilidir , özellikle bağışıklığı baskılanmış hastalarda ve yoğun bakım gerektiren hastalarda. İmmün sistemi baskılanmış hastalar, hematolojik maligniteleri olanlar (bir nötropeni atağından yeni kurtulmuş hastalarda), hematopoietik hücre nakli veya katı organ alıcıları ve çeşitli farklı hastalıklar için kemoterapötik ajanlar verilenler dahil olmak üzere kandidemi için özel risk altındadır. Diğer risk faktörleri, geniş gastrointestinal mukozal hasar, geniş spektrumlu antibiyotikler ve santral venöz kateterler ile ilişkilidir. Candida albicans, kandidiyazisin en tipik nedeni olmasına rağmen, birçok Candidaalbicans dışındaki türler son yıllarda izole edilmiştir [ 105 , 145 ]. C. albicans kan dolaşımına girdiğinde mesane ve böbrek enfeksiyonlarına, endoftalmit, menenjit, osteoartiküler enfeksiyonlar, endokardit, peritonit ve karın içi enfeksiyonlara, pnömoni, ampiyem, mediastinit ve perikardite neden olabilir.

          Kandidüri , idrarda Candida varlığını ifade eder . Kandidemi kaynağı olarak kandidüri tipik olarak idrar yolu anormallikleri olan hastalarda, çoğunlukla idrar yolu tıkanıklığı olanlarda ve/veya idrar yolu prosedürü geçirenlerde ortaya çıkar. Kolonizasyonu mesane enfeksiyonundan ayırt etmek genellikle zor olsa da hastanede yatan hastalarda sık görülür. Kandidüri varlığında renal transplantasyonun asendan enfeksiyon ve kandidemi için bir risk faktörü olduğu düşünülüyordu. Çalışmalar, kandidüri nedeniyle hastanede yatan hastaların %50'den fazlasında Candida albicans izole edildiğini göstermektedir [ 146 , 147 ].

          C. albicans erişkinlerde sıklıkla klinik olarak anlamlı pnömoniye neden olmaz. Buna rağmen, Candida albicans sıklıkla yoğun bakım ünitelerinde, entübe hastalarda veya kronik trakeostomili hastalarda solunum yollarından izole edilir. Çoğu durumda bu, bir enfeksiyonu değil, hava yollarının kolonizasyonunu yansıtır [ 105 ]. Candida pnömonisi, yaygın durumları olan ciddi bağışıklığı baskılanmış hastalarda, yetersiz doğum ağırlığına sahip yeni doğanlarda ve maligniteleri olan bireylerde kaydedilmiştir [ 148 , 149 , 150 ]. Kontaminasyon sorunları antemortem teşhisi karıştırdığından, invaziv Candida'nın nihai teşhisipnömoninin histolojik doğrulamaya ihtiyacı vardır ve bu da tipik olarak yalnızca otopside elde edilir. Bronkoalveoler lavaj, pnömoniyi doğrulamak ve neden olan patojeni belirlemek için bir teşhis aracıdır [ 151 ].

          Candida türleri, travma, eklem içi enjeksiyon, cerrahi bir prosedür veya enjeksiyon ilaç kullanımı sırasında hematojen tohumlama veya aşılama nedeniyle kemikleri ve eklemleri enfekte eder. Osteoartiküler enfeksiyonlar genellikle bir fungemi atağından veya cerrahi bir prosedürden aylar veya bir yıl sonra semptomatik hale gelir. Belirtiler genellikle aynı bölgelerdeki bakteriyel enfeksiyonlardan daha incedir. Bu faktörlerin her ikisi de, özellikle vertebral osteomiyelitli hastalarda tanıda uzun gecikmelere katkıda bulunur. Candida artritinin ana semptomları ağrı ve azalmış hareket açıklığı iken, lokal ağrı Candida osteomiyelitinin baskın semptomudur . Sadece bir Candidakoloni bir biyopside veya eklem sıvısı veya kemiğin aspire kültüründe patojen olarak kabul edilir [ 152 , 153 , 154 ].

          Merkezi sinir sisteminin kandida enfeksiyonları en tipik olarak meninksleri etkiler (bunların tümü genellikle nadir olmakla birlikte). Bu en sık prematüre bebeklerde olur. Enfeksiyon, hematojen yayılım veya doğrudan inokülasyona sekonder olabilir. Predispozan faktörler beyin cerrahisi, yeni antibiyotikler ve kortikosteroidleri içerir. Ateş, meningismus, yüksek beyin omurilik sıvısı basıncı ve lokalize nörolojik belirtiler sıklıkla mevcuttur. Candida albicans , diğer Candida türleri ile karşılaştırıldığında invaziv enfeksiyonlarda artmış mortalite oranlarına yol açan en patojenik Candida türleri gibi görünmektedir [ 155 , 156 ].

          Fungal endokardit, toplam endokardit spektrumunun %1-6'sını oluşturur. Candida endokarditi, en şiddetli kandidiyazis belirtilerinden biridir ve fungal endokarditin en yaygın nedenidir [ 157 ]. Kandidal enfektif endokarditin nadir görülmesi nedeniyle, Candida enfektif endokarditin prognozu, epidemiyolojisi ve optimal tedavisi yeterince açıklanmamıştır. Terapi prosedürleri, esas olarak tek bölgeli vaka serilerinden ve vaka raporlarından elde edilir. Kandida endokarditi, kandidemiden kaynaklanır ve genellikle protez kalp kapağı olan hastalarda, intravenöz ilaç enjekte eden kişilerde ve kalıcı santral venöz kateterleri ve uzamış fungemisi olan hastalarda görülür [158 ] .

          Candida albicans (ve diğer mayalar), sağlık çalışanlarının elleri veya kontamine materyal (örn. birden fazla hasta için kullanılan salinle santral venöz kateterin durulanması) yoluyla bulaşmayı içeren nozokomiyal enfeksiyonlara neden olabilir [141 , 159 ] . Kandidemi ve invaziv kandidoz tedavisindeki kritik zorluklar arasında önleme, erken teşhis ve uygun sistemik antifungal tedavinin hızla başlatılması yer alır. Tedaviye erken başlanması, daha kötü klinik sonuçlarla sonuçlanabilir [ 160 , 161 ]. Antifungal direncin ortaya çıkışı, küresel olarak yeni bir sorundur ve bu, C. albicans ve diğer Candida türlerinin neden olduğu enfeksiyonların tedavisinde ek bir endişe kaynağıdır .[ 162 , 163 , 164 ]. Yayınlanmış veriler, flukonazol antifungal profilaksinin yüksek riskli YBÜ hastalarında invaziv kandidiyazis insidansını azalttığını göstermektedir [ 165 ]. Bununla birlikte, antifungal profilaksinin direnç gelişimini destekleyebileceği akılda tutulmalıdır [ 163 ]. Hedefe yönelik antifungal profilaksi, karaciğer, pankreas, ince bağırsak veya hematopoietik kök hücrelerin yüksek riskli alıcılarında garanti edilir [ 166 ]. Enfeksiyon kaynağının kontrolü ve etkili sistemik antifungal tedavi ile tedaviye erken başlanması, genellikle invaziv kandidiyazis tanısı doğrulanmadan önce, invaziv kandidozun başarılı bir şekilde tedavi edilmesi için çok önemlidir [ 141 ,167 ]. Kaynak kontrolü, kontamine intravasküler kateterlerin çıkarılması, peritoneal sıvının boşaltılması, plevral sıvı veya apseler gibi enfeksiyon kaynağının çıkarılması anlamına gelir [ 12 , 168 ]. Enfeksiyonu başarılı bir şekilde tedavi etmek için bazen kalp pili, yapay eklem gibi enfekte protez cihazlarının veya mümkünse diğer protez cihazlarının çıkarılması gerekir [ 169 ]. Enfeksiyon kaynağının kontrol altına alınmasına ek olarak, erken etkili antifungal tedavi, invaziv kandidiyazlı hastaların başarılı bir şekilde tedavi edilmesinde çok önemlidir. Veriler, antifungal tedavi geciktiğinde veya yetersiz olduğunda veya hızlı kaynak kontrolü sağlanamadığında önemli ölçüde daha yüksek mortaliteye işaret etmektedir [ 105 , 141 ,170 ].

          Yayınlanmış birkaç kılavuz, spesifik klinik durumlar için ayrıntılı önerilerle birlikte, invaziv kandidoz tedavisi için uzman tavsiyelerini özetlemektedir [ 105 , 171 , 172 , 173 ] (Tablo 2). Başlangıç ​​tedavisi için bir antifungal ilacın seçimi, antifungal ilaçlar için izole edilmiş bir C. albicans suşunun önceden test edilmesine, hastanın antifungal maddeye duyarlılığına ve hastalığın ciddiyetine, ilgili komorbiditelere ve beyin tutulumuna, kalp kapakçıklarına veya iç organlara dayanmalıdır [174 , 175 ] . Belirli klinik birimler ayrıca Candida spp. duyarlılığına ilişkin verileri de dikkate almalıdır . enfeksiyonlar. Tablo 2


          İnvaziv kandidiyazın önerilen tedavileri.
          Tercih Edilen Başlangıç ​​Tedavisi Alternatif Başlangıç ​​Tedavisi Tercih Edilen Basamak Tedavisi
          ekinokandin flukonazol flukonazol
          Ayrı bir pencerede aç
          Git: 4. Sonuçlar


          Dimorfizm, biyofilm oluşumu, tigmotropizm, adezyon proteinlerinin ekspresyonu ve hücre dışı hidrolitik enzimlerin salgılanması gibi geniş aralıkları nedeniyle, C. albicans'ın patojenite faktörlerini ve mekanizmalarını tam olarak bilmek son derece önemlidir . C. albicans, yüzeyselden sistemik ve yaşamı tehdit eden enfeksiyonlara neden olabilir.

          Virülans faktörlerini bilmenin yanı sıra, nötropeni, immünsupresyon, diyabet, yaş gibi kandidiyazis gelişimi için temel predispozan faktörlerin yanı sıra hasta bakımı, uzun süreli antimikrobiyal tedavi, uzun süreli hastanede yatış, kateter kullanımı ve cerrahi ile ilgili faktörler hakkında bilgi de gereklidir.

          Tüm bu faktörler hakkındaki bilgi arttıkça, C. albicans'ın neden olduğu enfeksiyonların oluşmasını önlemek için çalıştıkça önleme olasılığı artar ve yeni teşhis ve tedavi olanakları geliştirmek için fırsatlar yaratılır.

          Git: Yazar katkıları


          Makalenin yazılması: JT, MJ, TM, EP, SB ve IK; metnin güncellenmesi: JT ve I.Ş.; literatür taraması: JT, MJ, TM, EP, SB, IK ve I.Ş.; şekil çizimleri: I.Ş.; taslağın eleştirel incelemesi: I.Š.; el yazmasının düzenlenmesi ve düzenlenmesi: I.Š. Tüm yazarlar makalenin yayınlanan versiyonunu okudu ve kabul etti.

          Git: Finansman


          Bu araştırma herhangi bir dış finansman almamıştır.

          Git: Kurumsal İnceleme Kurulu Beyanı


          Uygulanamaz.

          Git: Bilgilendirilmiş Onam Beyanı


          Uygulanamaz.

          Git: Çıkar çatışmaları


          Yazarlar herhangi bir çıkar çatışması beyan etmemektedir. Finansörlerin çalışmanın tasarımında hiçbir rolü yoktu; verilerin toplanmasında, analiz edilmesinde veya yorumlanmasında; makalenin yazılmasında veya sonuçların yayınlanması kararında.

          Git: Dipnotlar


          Yayıncının Notu: MDPI, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


          Git: Referanslar

          1. Mukaremera L., Lee KK, Mora-Montes HM, Gow NAR Candida albicans mayası, pseudohyphal ve hyphal morphogenesis, immün tanımayı farklı şekilde etkiler. Ön. immünol. 2017; 8 :1. doi: 10.3389/fimmu.2017.00629. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          2. Morad HOJ, Wild A.-M., Wiehr S., Davies G., Maurer A., ​​Pichler BJ, Thornton CR ImmunoPET/MR Kullanılarak İnvaziv Kandidiyazın Klinik Öncesi Görüntülenmesi. Ön. Mikrobiyoloji. 2018; 9 :1996. doi: 10.3389/fmicb.2018.01996. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          3. Chen H., Zhou X., Ren B., Cheng L. Candida albicans'ta hif büyümesinin düzenlenmesi. virülans. 2020; 11 :337–348. doi: 10.1080/21505594.2020.1748930. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          4. Basmacıyan L., Bon F., Paradis T., Lapaquette P., Dalle F. Candida Albicans'ın Konakla Etkileşimleri: Bağırsak Epitel Bariyerini Aşmak. Doku Bariyerleri. 2019; 7 :1612661. doi: 10.1080/21688370.2019.1612661. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          5. Walker GM, White NA Mantar Fizyolojisine Giriş. İçinde: Kavanagh K., editör. Mantarlar: Biyoloji ve Uygulamalar. Wiley-Blackwell; Chichester, Birleşik Krallık: 2017. s. 4. [ Google Akademik ]
          6. Molero G., Díez-Orejas R., Navarro-García F., Monteoliva L., Pla J., Gil C., Sánchez-Pérez M., Nombela C. Candida albicans: Genetics, dimorphism and pathogenicity. Int. Mikrobiyoloji. 1998; 1 :95–106. [ PubMed ] [ Google Akademik ]
          7. Kornitzer D. Candida albicans hifal morfojenezinin endojen sinyallerle düzenlenmesi. J. Mantarlar. 2019; 5 doi: 10.3390/jof5010021. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          8. Basso V., d'Enfert C., Znaidi S., Bachellier-Bassi S. Genlerden ağlara: Candida albicans morfojenezini kontrol eden düzenleyici devre. İçinde: Rodrigues M., editör. Mantar Fizyolojisi ve İmmünopatogenez: Mikrobiyoloji ve İmmünolojide Güncel Konular. Cilt 422. Springer; Berlin/Heidelberg, Almanya: 2019. sayfa 61–99. [ PubMed ] [ Google Akademik ]
          9. Garcia-Rubio R., de Oliveira HC, Rivera J., Trevijano-Contador N. Mantar Hücre Duvarı: Candida, Cryptococcus ve Aspergillus Türleri. Ön. Mikrobiyoloji. 2020; 10 :2993. doi: 10.3389/fmicb.2019.02993. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          10. Höfs S., Mogavero S., Hube B. Candida albicans'ın konak hücrelerle etkileşimi: Virülans faktörleri, konak savunması, kaçış stratejileri ve mikrobiyota. J. Mikrobiyoloji. 2016; 54 :149–169. doi: 10.1007/s12275-016-5514-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          11. Reyna-Beltrán E., Isaac Bazán Méndez C., Iranzo M., Mormeneo S., Pedro Luna-Arias J. Candida albicans'ın Hücre Duvarı: Bir Proteomik Görünüm. İçinde: Sandai D., editör. Candida Albicans. IntechAçık; Londra, Birleşik Krallık: 2019. [ Google Scholar ]
          12. Ciurea CN, Kosovski I.-B., Mare AD, Toma F., Pintea-Simon IA, Man A. Candida and Candidiasis—Opportunism Versus Pathogenicity: A Review of the Virulans Traits. mikroorganizmalar. 2020; 8 :857. doi: 10.3390/microorganisms8060857. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          13. Salon RA Etkilemek için giyinmiş: Çevresel adaptasyonun Candida albicans hücre duvarı üzerindeki etkisi. Mol. Mikrobiyoloji. 2015; 97 :7–17. doi: 10.1111/mmi.13020. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          14. Jordá T., Puig S. Saccharomyces cerevisiae'de Ergosterol Biyosentezinin Düzenlenmesi. genler. 2020; 11 :795. doi: 10.3390/genes11070795. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          15. Cho I., Jackson MR, Swift J. Hücresel Homeostazın Sürdürülmesinde Membranlar Arası Taşıma ve Sinyallemenin Rolleri. Hücre. Mol. Biyomüh. 2016; 9 :234–246. doi: 10.1007/s12195-016-0439-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          16. Viana R., Dias O., Lagoa D., Galocha M., Rocha I., Teixeira MC İnsan Patojeni Candida albicans'ın Genom Ölçekli Metabolik Modeli: İlaç Hedef Tahmini için Umut Veren Bir Platform. J. Mantarlar. 2020; 6 :171. doi: 10.3390/jof6030171. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          17. Candida Türlerinin Patojenitesine Katkıda Bulunan Deorukhkar SC Virülans Özellikleri. J. Mikrobiyoloji. Tecrübe. 2017; 5 doi: 10.15406/jmen.2017.05.00140. [ CrossRef ] [ Google Akademik ]
          18. Noble SM, Gianetti BA, Witchley JN Candida albicans, memeli konakçıda hücre tipi anahtarlama ve fonksiyonel plastisite. Nat. Rev. Mikrobiyoloji. 2017; 15 :96–108. doi: 10.1038/nrmicro.2016.157. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          19. Hanaoka M., Domae E. Candidalysin maruziyeti üzerine oral epitelyal hücrelerden salınan IL-la, doğuştan gelen erken bir epitel tepkisini başlatır. Int. immünol. 2020 doi: 10.1093/intimm/dxaa070. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          20. Gale C., Gerami-Nejad M., McClellan M., Vandoninck S., Longtine MS, Berman J. Candida albicans Int1p, Maya ve Hif Hücrelerinde Septin Halkası ile Etkileşir. Mol. Biol. Hücre. 2001; 12 :3538–3549. doi: 10.1091/mbc.12.11.3538. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          21. Candida albicans hyphae'nin Ani PE Büyümesi. Nat. Rev. Mikrobiyoloji. 2011; 9 :737–748. doi: 10.1038/nrmicro2636. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          22. Mayer FL, Wilson D., Hube B. Candida albicans patojenite mekanizmaları. virülans. 2013; 4 :119–128. doi: 10.4161/viru.22913. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          23. Tsui C., Kong EF, Jabra-Rizk MA Candida albicans biyofilminin patogenezi. Patog. Dis. 2016; 74 :ftw018. doi: 10.1093/femspd/ftw018. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          24. Maza PK, Bonfim-Melo A., Padovan ACB, Mortara RA, Orikaza CM, Ramos LMD, Moura TR, Soriani FM, Almeida RS, Suzuki E., et al. Candida albicans: Epitel hücrelerini işgal etme ve oksidatif stres altında hayatta kalma yeteneği, hifal uzunluğuyla bağlantılı değildir. Ön. Mikrobiyoloji. 2017; 8 doi: 10.3389/fmicb.2017.01235. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          25. Galocha M., Pais P., Cavalheiro M., Pereira D., Viana R., Teixeira MC C. Albicans ve C. Glabrata'da virülansa karşı farklı yaklaşımlar: Aynı madalyonun iki yüzü. Int. J. Mol. bilim 2019; 20 :2345. doi: 10.3390/ijms20092345. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          26. Lin CJ, Chen YL Candida albicans ve candida tropicalis'te CAMP/PKA sinyal yolunun korunmuş ve farklı işlevleri. J. Mantarlar. 2018; 4:68 . doi: 10.3390/jof4020068. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          27. Moyes DL, Wilson D., Richardson JP, Mogavero S., Tang SX, Wernecke J., Höfs S., Gratacap RL, Robbins J., Runglall M., et al. Candidalysin, mukozal enfeksiyon için kritik olan bir mantar peptit toksinidir. Doğa. 2016; 532 :64–68. doi: 10.1038/nature17625. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          28. Naglik JR, Gaffen SL, Hube B. Candidalysin: Candida albicans enfeksiyonlarında keşif ve işlev. Curr. görüş. Mikrobiyoloji. 2019; 52 :100–109. doi: 10.1016/j.mib.2019.06.002. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          29. Kasper L., König A., Koenig PA, Gresnigt MS, Westman J., Drummond RA, Lionakis MS, Groß O., Ruland J., Naglik JR, et al. Fungal peptit toksini Candidalysin, NLRP3 inflamatuarını aktive eder ve mononükleer fagositlerde sitolize neden olur. Nat. komün. 2018; 9 :1–20. doi: 10.1038/s41467-018-06607-1. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          30. König A., Hube B., Kasper L. Candida albicans sırasında Fungal Toxin Candidalysin'in İkili İşlevi — Makrofaj Etkileşimi ve Virülans. toksinler. 2020; 12 :469. doi: 10.3390/toksinler12080469. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          31. Priya A., Pandian SK Piperine, Candida albicans'ın Biyofilm Oluşumunu ve Hifal Morfogenezini Engeller. Ön. Mikrobiyoloji. 2020; 11 doi: 10.3389/fmicb.2020.00756. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          32. Talapko J., Škrlec I. Biyofilm Enfeksiyonunun Tedavisinde Geleneksel Olmayan Ajanların İlkeleri, Mekanizmaları ve Faydaları. İlaçlar. 2020; 13 :299. doi: 10.3390/ph13100299. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          33. McCall AD, Pathirana RU, Prabhakar A., ​​Cullen PJ, Edgerton M. Candida albicans biyofilm gelişimi, kooperatif bağlanma ve yapışma bakım proteinleri tarafından yönetilir. NPJ Biyofilmleri Mikrobiyomları. 2019; 5 :1–12. doi: 10.1038/s41522-019-0094-5. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          34. Cavalheiro M., Teixeira MC Candida Biyofilmleri: Tehditler, zorluklar ve gelecek vaat eden stratejiler. Ön. Med. 2018; 5:28 . doi: 10.3389/fmed.2018.00028. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          35. Li W., Wang JJ, Qian H., Tan L., Zhang Z., Liu H., Pan Y., Zhao Y. Vibrio parahaemolyticus'un Biyofilm Oluşumunda Hücre Dışı DNA ve Hücre Dışı Proteinlerin Rolüne Dair Görüşler. Ön. Mikrobiyoloji. 2020; 11 doi: 10.3389/fmicb.2020.00813. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          36. Karygianni L., Ren Z., Koo H., Thurnheer T. Biofilm Matrixome: Yapılandırılmış Mikrobiyal Topluluklarda Hücre Dışı Bileşenler. Trendler Microbiol. 2020; 28 :668–681. doi: 10.1016/j.tim.2020.03.016. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          37. Nett JE, Andes DR Biyofilm matrisinin kandida patogenezine katkıları. J. Mantarlar. 2020; 6:21 . doi: 10.3390/jof6010021. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          38. Paluch E., Rewak-Soroczyńska J., Jędrusik I., Mazurkiewicz E., Jermakow K. Quorum quenching ile biyofilm oluşumunun önlenmesi. Uygulama Mikrobiyoloji. Biyoteknoloji 2020; 104 :1871–1881. doi: 10.1007/s00253-020-10349-w. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          39. Perry AM, Hernday AD, Nobile CJ Candida albicans'ın Cinsel Biyofilmleri Nasıl Oluşturduğunu Çözüyor. J. Mantarlar. 2020; 6:14 . doi: 10.3390/jof6010014. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          40. Glazier VE, Murante T., Murante D., Koselny K., Liu Y., Kim D., Koo H., Krysan DJ Basit ve karmaşık haploinsufficiency kullanarak Candida albicans biyofilm transkripsiyon faktörü ağının genetik analizi. PLoS Genet. 2017; 13 :e1006948. doi: 10.1371/journal.pgen.1006948. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          41. Rodríguez-Cerdeira C., Martínez-Herrera E., Carnero-Gregorio M., López-Barcenas A., Fabbrocini G., Fida M., El-Samahy M., González-Cespón JL Vulvovajinal Kandidiyazda Candida Biyofilmlerinin Patogenezi ve Klinik İlişkisi. Ön. Mikrobiyoloji. 2020; 11 :2884. doi: 10.3389/fmicb.2020.544480. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          42. Bartnicka D., Karkowska-Kuleta J., Zawrotniak M., Satała D., Michalik K., Zielinska G., Bochenska O., Kozik A., Ciaston I., Koziel J., et al. Çift tür biyofilminde Candida albicans ve Porphyromonas gingivalis arasındaki yapışkan protein aracılı çapraz konuşma, anaerobik bakteriyi elverişsiz oksik ortamda korur. bilim 2019 ; 9 doi: 10.1038/s41598-019-40771-8. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          43. Ganguly S., Mitchell AP Candida albicans'ın mukozal biyofilmleri. Curr. görüş. Mikrobiyoloji. 2011; 14 :380–385. doi: 10.1016/j.mib.2011.06.001. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          44. Murillo LA, Newport G., Lan CY, Habelitz S., Dungan J., Agabian NM Candida albicans tarafından biyofilm oluşumunun erken evresinin genom çapında transkripsiyon profili. ökaryot. Hücre. 2005; 4 :1562–1573. doi: 10.1128/EC.4.9.1562-1573.2005. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          45. Bonhomme J., d'Enfert C. Candida albicans biyofilmleri: Heterojen, ilaca toleranslı bir ortam oluşturmak. Curr. görüş. Mikrobiyoloji. 2013; 16 :398–403. doi: 10.1016/j.mib.2013.03.007. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          46. ​​Mallick EM, Bergeron AC, Jones SK, Newman ZR, Brothers KM, Creton R., Wheeler RT, Bennett RJ Fenotipik Plastisite, Candida albicans Etkileşimlerini ve Omurgalı Konağındaki Virulansı Düzenler. Ön. Mikrobiyoloji. 2016; 7 :780. doi: 10.3389/fmicb.2016.00780. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          47. Brimacombe CA, Sierocinski T., Dahabieh MS Maya Torulaspora mikroelipsoidlerinde beyazdan opak benzeri bir fenotipik geçiş. komün. Biol. 2020; 3 :1–11. doi: 10.1038/s42003-020-0815-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          48. Wibawa T. Candida albicans patojenitesinde virülans faktörlerinin rolü. J.Med. bilim 2016; 48 :58–68. doi: 10.19106/JMedSci004801201606. [ CrossRef ] [ Google Akademik ]
          49. Nobile CJ, Johnson AD Candida albicans Biyofilmler ve İnsan Hastalığı. Annu. Rev. Mikrobiyoloji. 2015; 69 :71–92. doi: 10.1146/yıllık-mikro-091014-104330. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          50. Naglik JR, Challacombe SJ, Hube B. Candida albicans Salgılanan Aspartil Proteinazları Virülans ve Patogenezde. Mikrobiyoloji. Mol. Biol. Rev. 2003; 67 :400–428. doi: 10.1128/MMBR.67.3.400-428.2003. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          51. Lewis MAO, Williams DW Oral kandidozun teşhisi ve yönetimi. Br. Diş. J.2017 ; 223 :675–681. doi: 10.1038/sj.bdj.2017.886. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          52. Peters BA, Wu J., Hayes RB, Ahn J. Oral mantar mikobiyomu: Bir pilot çalışmada periodontitis ile ilgili özellikler ve ilişki. BMC Mikrobiyoloji. 2017; 17 :157. doi: 10.1186/s12866-017-1064-9. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          53. Sav H., Altınbaş R., Beştepe Dursun Z. Oral kandidiyazisli hastalarda mantar profili ve antifungal duyarlılık paterni. Infez. Med. 2020; 28 :392–396. [ PubMed ] [ Google Akademik ]
          54. Aslani N., Janbabaei G., Abastabar M., Meis JF, Babaeian M., Khodavaisy S., Boekhout T., Badali H. MALDI-TOF kütle spektrometresi ile kanser hastalarından yaygın olmayan oral mayaların tanımlanması. BMC Enfeksiyonu. Dis. 2018; 18:24 . doi: 10.1186/s12879-017-2916-5. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          55. Rafiq NB Candidiasis. StatPearls. 2020:1261–1267. doi: 10.1007/978-3-540-75387-2_121. [ CrossRef ] [ Google Akademik ]
          56. Zdanavičienė E., Sakalauskienė J., Gleiznys A., Gleiznys D., Žilinskas J. Candida albicans'a yanıt veren ev sahibi. Bir inceleme. Diş hekimliği. 2017; 19 :109–123. [ PubMed ] [ Google Akademik ]
          57. Baumgardner DJ Oral Mantar Mikrobiyotası: Pamukçuk ve Ötesine. J. Hasta Merkezi. Res. Rev. 2019; 6 :252–261. doi: 10.17294/2330-0698.1705. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          58. Serrano J., López-Pintor RM, Ramírez L., Fernández-Castro M., Sanz M., Melchor S., Peiteado D., Hernández G. Primer Sjögren sendromlu hastalarda oral kandidiyaz ile ilgili risk faktörleri. Med. Oral Patol. Oral Sir. Bukal. 2020; 25 :e700–e705. doi: 10.4317/medoral.23719. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          59. Suryana K., Suharsono H., Antara IGPJ HIV/AIDS ile yaşayan kişilerde oral kandidiyazis ile ilişkili faktörler: Bir vaka kontrol çalışması. HIV/AIDS Arş. Palliat. Bakım. 2020; 12 :33–39. doi: 10.2147/HIV.S236304. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          60. Du X., Xiong H., Yang Y., Yan J., Zhu S., Chen F. HAART sırasında HIV ile enfekte hastalarda oral Candida enfeksiyonu ve bağışıklık durumunun dinamik çalışması. Ark. Oral Biol. 2020; 115 :104741. doi: 10.1016/j.archoralbio.2020.104741. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          61. Hellstein JW, Marek CL Candidiasis: Ağız Boşluğunda Kırmızı ve Beyaz Tezahürler. Baş Boyun Patol. 2019; 13 :25–32. doi: 10.1007/s12105-019-01004-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          62. Millsop JW, Fazel N. Oral kandidiyazis. klinik Dermatol. 2016; 34 :487–494. doi: 10.1016/j.clindermatol.2016.02.022. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          63. O'Donnell LE, Millhouse E., Sherry L., Kean R., Malcolm J., Nile CJ, Ramage G. Polimikrobiyal Candida biyofilmleri: Ağız boşluğundaki dostlar ve düşmanlar. FEMS Maya Çöz. 2015; 15 doi: 10.1093/femsyr/fov077. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          64. Gad MM, Fouda SM Candida albicans ile ilişkili takma diş stomatit tedavisinin güncel perspektifleri ve geleceği. Diş. Med. Sorun 2020; 57 :95–102. doi: 10.17219/dmp/112861. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          65. Kirkpatrick CH, Hill HR Kronik mukokutanöz kandidiyazis. Pediatr. bulaştırmak. Dis. J.2001 ; 20 :197–206. doi: 10.1097/00006454-200102000-00017. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          66. Sanghvi R., Siddik D., Hullah E., Shah T., Carey B. Kronik mukokutanöz kandidiyazis: Pediatrik diş hekimliğinde nadir görülen bir tanı. Br. J. Oral Maksillofak. cerrahi 2020; 58 :708–710. doi: 10.1016/j.bjoms.2020.03.025. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          67. Qin Y., Zhang L., Xu Z., Zhang J., Jiang YY, Cao Y., Yan T. Candida albicans enfeksiyonu üzerine doğal immün hücre tepkisi. virülans. 2016; 7 :512–526. doi: 10.1080/21505594.2016.1138201. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          68. Richardson JP, Moyes DL Candida albicans enfeksiyonuna karşı uyarlanabilir bağışıklık yanıtları. virülans. 2015; 6 :327–337. doi: 10.1080/21505594.2015.1004977. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          69. Kumamoto CA Enflamasyon ve gastrointestinal Candida kolonizasyonu. Curr. görüş. Mikrobiyoloji. 2011; 14 :386–391. doi: 10.1016/j.mib.2011.07.015. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          70. Cassone A. Vulvovajinal Candida albicans enfeksiyonları: Patogenez, bağışıklık ve aşı beklentileri. BJOG Uluslararası J. Obstet. Jinekol. 2015; 122 :785–794. doi: 10.1111/1471-0528.12994. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          71. Kashem SW, Kaplan DH Candida albicans'a Cilt Bağışıklığı. Trendler İmmunol. 2016; 37 :440–450. doi: 10.1016/j.it.2016.04.007. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          72. Ng WF, Von Delwig A., Carmichael AJ, Arkwright PD, Abinun M., Cant AJ, Jolles S., Lilic D. Otoimmün poliendokrinopati-kandidiyazis-ektodermal distrofi olan ve olmayan kronik mukokutanöz kandidiyazlı hastalarda bozulmuş TH17 yanıtları. J. Alerji Kliniği. immünol. 2010; 126 doi: 10.1016/j.jaci.2010.08.027. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          73. Soltész B., Tóth B., Sarkadi AK, Erdos M., Maródi L. İnsanlarda mukokutanöz kandidiyaza karşı savunmada IL-17 aracılı bağışıklığın gelişen görüşü. Int. Bağışıklık. 2015; 34 :348–363. doi: 10.3109/08830185.2015.1049345. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          74. Bolognia J., Schaffer J., Cerroni L. Dermatology. 4. baskı Cilt 2. Elsevier; Amsterdam, Hollanda: 2018. [ Google Scholar ]
          75. Chevalier M., Ranque S., Prêcheur I. İn vitro oral mantar-bakteriyel biyofilm modelleri: Bir gözden geçirme. Med. Mikol. 2018; 56 :653–667. doi: 10.1093/mmy/myx111. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          76. Salehi B., Kregiel D., Mahady G., Sharifi-Rad J., Martins N., Rodrigues CF Management of Streptococcus mutans-Candida spp. Oral Biyofilmlerin Enfeksiyonları: Etkili Klinik Müdahalelerin Önünü Açmak. J. Clin. Med. 2020; 9 :517. doi: 10.3390/jcm9020517. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          77. Pereira DFA, Seneviratne CJ, Koga-Ito CY, Samaranayake LP Oral mantar patojeni Candida albicans bir kariojen midir? Oral Dis. 2018; 24 :518–526. doi: 10.1111/odi.12691. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          78. Yoo HJ, Jwa SK β-karyofilenin Streptococcus mutans biyofilmi üzerindeki inhibitör etkileri. Ark. Oral Biol. 2018; 88 :42–46. doi: 10.1016/j.archoralbio.2018.01.009. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          79. Sampaio AA, Souza SE, Ricomini-Filho AP, Del Bel Cury AA, Cavalcanti YW, Cury JA Candida albicans, Streptococcus mutans Biofilm tarafından Provoke Edilen Dentin Demineralizasyonunu Artırır. Çürük Res. 2019; 53 :322–331. doi: 10.1159/000494033. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          80. Abrantes PMDS, Africa CWJ Gerçek zamanlı empedans tabanlı bir sistem kullanarak Streptococcus mutans, Streptococcus sanguinis ve Candida albicans biyofilm oluşumunun ölçülmesi. J. Mikrobiyoloji. Yöntemler. 2020; 169 doi: 10.1016/j.mimet.2019.105815. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          81. Diaz PI, Valm AM Oral Topluluklardaki Mikrobiyal Etkileşimler Acil Biyofilm Özelliklerine Aracılık Eder. J. Dent. Res. 2020; 99 :18–25. doi: 10.1177/0022034519880157. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          82. Sztukowska MN, Dutton LC, Delaney C., Ramsdale M., Ramage G., Jenkinson HF, Nobbs AH, Lamont RJ inIJ ve Als3'ün aracılık ettiği Porphyromonas gingivalis ve Candida albicans arasındaki topluluk gelişimi. MBio. 2018; 9 doi: 10.1128/mBio.00202-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          83. Bartnicka D., Gonzalez-Gonzalez M., Sykut J., Koziel J., Ciaston I., Adamowicz K., Bras G., Zawrotniak M., Karkowska-Kuleta J., Satala D., et al. Candida albicans, periodontal öldürücü porphyromonas gingivalis'i konak bağışıklık sistemi tarafından tanınmaktan korur ve dişeti dokusunun bakteriyel enfeksiyonunu destekler. Int. J. Mol. bilim 2020; 21 :1984. doi: 10.3390/ijms21061984. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          84. Ağız, Boğaz ve Yemek Borusunun Candida Enfeksiyonlarını Hastalık Kontrol ve Önleme Merkezleri. [(4 Ocak 2021'de erişildi)];Çevrimiçi olarak erişilebilir: https://www.cdc.gov/fungal/diseases/...ush/index.html
          85. Faith JJ, Guruge JL, Charbonneau M., Subramanian S., Seedorf H., Goodman AL, Clemente JC, Knight R., Heath AC, Leibel RL, et al. İnsan bağırsağı mikrobiyotasının uzun vadeli stabilitesi. Bilim. 2013; 341 :1237439. doi: 10.1126/science.1237439. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          86. Sekirov I., Russell SL, Caetano M., Antunes L., Finlay BB Sağlıkta ve hastalıkta bağırsak mikrobiyotası. Fizyol. Rev. 2010; 90 :859–904. doi: 10.1152/physrev.00045.2009. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          87. Jeziorek M., Frej-Mądrzak M., Choroszy-Król I. Diyetin gastrointestinal Candida türleri üzerindeki etkisi. Candida türlerinin kolonizasyonu ve duyarlılığı. antifungal ilaçlara. Rocz. Panstw. Zakl. Merhaba. 2019; 70 :195–200. doi: 10.32394/rpzh.2019.0070. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          88. Mishra AA, Koh AY Gastrointestinal Sistem Kolonizasyonu Sırasında Candida albicans'ın Adaptasyonu. Curr. klinik Mikrobiyoloji. 2018 ; 5 :165–172. doi: 10.1007/s40588-018-0096-8. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          89. Tong Y., Tang J. Candida albicans enfeksiyonu ve bağırsak bağışıklığı. Mikrobiyoloji. Res. 2017; 198 :27–35. doi: 10.1016/j.micres.2017.02.002. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          90. Zhu W., Filler SG Candida albicans'ın epitel hücreleri ile Etkileşimleri. Hücre. Mikrobiyoloji. 2010; 12 :273–282. doi: 10.1111/j.1462-5822.2009.01412.x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          91. Allert S., Förster TM, Svensson CM, Richardson JP, Pawlik T., Hebecker B., Rudolphi S., Juraschitz M., Schaller M., Blagojevic M., et al. Candida albicans'ın neden olduğu epitel hasarı, bağırsak bariyerlerinden translokasyona aracılık eder. MBio. 2018; 9 doi: 10.1128/mBio.00915-18. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          92. Robertson KD, Nagra N., Mehta D. Özofagus Kandidiyazı. StatPearls. 2013; 1 :64–65. doi: 10.1016/S2212-0971(13)70029-3. [ CrossRef ] [ Google Akademik ]
          93. Mohamed AA, Lu XL, Mounmin FA Özofagus Kandidiyazının Teşhisi ve Tedavisi: Güncel Güncellemeler. Olabilmek. J. Gastroenterol. Hepatol. 2019; 2019 tarihi: 10.1155/2019/3585136. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          94. Rosołowski M., Kierzkiewicz M. Enfeksiyöz özofajitin etiyolojisi, tanı ve tedavisi. Prz. Gastroenterol. 2013; 8 :333–337. doi: 10.5114/pg.2013.39914. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          95. Alsomali MI, Arnold MA, Frankel WL, Graham RP, Hart PA, Lam-Himlin DM, Naini BV, Voltaggio L., Arnold CA "Klasik" özofagus kandidiyazına meydan okumalar: Görünüş genellikle aldatıcıdır. Am. J. Clin. Pathol. 2017; 147 :33–42. doi: 10.1093/AJCP/AQW210. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          96. Hoversten P., Otaki F., Katzka DA Tek Merkezde Özofagus Kandidiyazis Kursu ve Hastaların Sonuçları. klinik Gastroenterol. Hepatol. 2019; 17 :200–202.e1. doi: 10.1016/j.cgh.2018.04.035. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          97. Mushi MF, Ngeta N., Mirambo MM, Mshana SE Tanzanya'daki üçüncü basamak bir hastanede endoskopi ünitesine başvuran hastalar arasında özofagus kandidiyazının tahmin edicileri: Retrospektif bir kesitsel çalışma. Afr. Sağlık Bilimi 2018; 18 :66–71. doi: 10.4314/ahs.v18i1.10. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          98. Hoversten P., Kamboj AK, Katzka DA Özofagus enfeksiyonları: Risk faktörleri, tanı ve yönetim üzerine bir güncelleme. Dis. yemek borusu. 2018; 31 doi: 10.1093/dote/doy094. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          99. Castelo Branco S., Ferreira AT, Saraiva S., Silva MJ, Garcia T. Fungal Gastroduodenitis. Avro. J. Vaka Temsilcisi Stajyer. Med. 2017; 2 doi: 10.12890/2017_000628. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          100. Stamatiades GA, Ioannou P., Petrikkos G., Tsioutis C. Enflamatuvar barsak hastalığı olan hastalarda mantar enfeksiyonları: Sistematik bir derleme. Mikozlar. 2018; 61 :366–376. doi: 10.1111/myc.12753. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          101. Moyes DL, Richardson JP, Naglik JR Candida albicans-epitelyal etkileşimler ve patojenite mekanizmaları: Yüzeyi çizmek. virülans. 2015; 6 :338–346. doi: 10.1080/21505594.2015.1012981. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          102. Naglik JR, König A., Hube B., Gaffen SL Candida albicans – epitelyal etkileşimler ve mukozal doğuştan gelen bağışıklığın indüksiyonu. Curr. görüş. Mikrobiyoloji. 2017; 40 :104–112. doi: 10.1016/j.mib.2017.10.030. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          103. Richardson JP, Ho J., Naglik JR Candida–epitelyal etkileşimler. J. Mantarlar. 2018; 4:22 . doi: 10.3390/jof4010022. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          104. Gil-Bona A., Amador-García A., Gil C., Monteoliva L. Candida albicans'ın dış yüzü: Hücre yüzeyinin ve hücre dışı ortamın proteomik görünümü. J. Proteom. 2018; 180 :70–79. doi: 10.1016/j.jprot.2017.12.002. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          105. Pappas PG, Kauffman CA, Andes DR, Clancy CJ, Marr KA, Ostrosky-Zeichner L., Reboli AC, Schuster MG, Vazquez JA, Walsh TJ, et al. Candidiasis Yönetimi için Klinik Uygulama Kılavuzu: Amerika Bulaşıcı Hastalıklar Derneği tarafından 2016 Güncellemesi. klinik bulaştırmak. Dis. 2015; 62 :e1–e50. doi: 10.1093/cid/civ933. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          106. Metin A., Dilek N., Bilgili SG Tekrarlayan aday intertrigo: Zorluklar ve çözümler. klinik kozmetik Araştırmak Dermatol. 2018; 11 :175–185. doi: 10.2147/CCID.S127841. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          107. Leggit JC Akut ve Kronik Paronişi. Am. Dostum. Doktor. 2017; 96 :44–51. [ PubMed ] [ Google Akademik ]
          108. Schlager E., Ashack K., Khachemoune A. Erosio interdigitalis blastomycetica: Interdigital candidiasis'in gözden geçirilmesi. Dermatol. Çevrimiçi J.2018 ; 24 :13030. [ PubMed ] [ Google Akademik ]
          109. Spinillo A., Pizzoli G., Colonna L., Nicola S., De Seta F., Guaschino S. İdiyopatik tekrarlayan vulvovajinal kandidiyazlı kadınların epidemiyolojik özellikleri. Obs. jinekol. 1993; 5 :721–727. doi: 10.1016/0020-7292(94)90096-5. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          110. Swamiappan M. Anogenital kaşıntı—Genel bir bakış. J. Clin. teşhis Res. 2016; 10 :WE01–WE03. doi: 10.7860/JCDR/2016/18440.7703. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          111. Visscher MO, Adam R., Brink S., Odio M. Yenidoğan bebek cildi: Fizyoloji, gelişim ve bakım. klinik Dermatol. 2015; 33 :271–280. doi: 10.1016/j.clindermatol.2014.12.003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          112. Darmstadt GL, Dinulos JG, Miller Z. Konjenital kutanöz kandidiyazis: Klinik sunum, patogenez ve yönetim kılavuzları. pediatri 2000; 105 :438–444. doi: 10.1542/peds.105.2.438. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          113. Greenberg RG, Benjamin DK Neonatal kandidiyazis: Teşhis, korunma ve tedavi. J. Bulaş. 2014; 69 :S19–S22. doi: 10.1016/j.jinf.2014.07.012. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          114. Grimbacher B., Holland SM, Gallin JI, Greenberg F., Hill SC, Malech HL, Miller JA, O'Connell AC, Dent B., Puck JM Tekrarlayan enfeksiyonlarla hiper-IgE sendromu—A otozomal dominant çoklu sistem bozukluğu. İngilizce J.Med. 1999; 340 :692–702. doi: 10.1056/NEJM199903043400904. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          115. Yüksek IgE ile Mogensen TH Birincil İmmün Yetmezlikler. Int. Bağışıklık. 2016; 35 :39–56. doi: 10.3109/08830185.2015.1027820. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          116. Milner JD, Brenchley JM, Laurence A., Freeman AF, Hill BJ, Elias KM, Kanno Y., Spalding C., Elloumi HZ, Paulson ML, et al. Otozomal dominant hiper-IgE sendromlu kişilerde bozulmuş TH17 hücre farklılaşması. Doğa. 2008; 452 :773–776. doi: 10.1038/nature06764. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          117. Wang YC, Tsai IC, Lin C., Hsieh WP, Lan CY, Chuang YJ, Chen B. Sen Candida albicans enfeksiyonlarında patojenik ve savunma mekanizmaları için temel fonksiyonel modüller. Biyomed. Res. Int. 2014; 2014 :136130–136130. doi: 10.1155/2014/136130. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          118. de Leon EM, Jacober SJ, Sobel JD, Foxman B. Tip 1 ve tip 2 diyabetli kadınlarda vajinal Candida kolonizasyonu için prevalans ve risk faktörleri. BMC Enfeksiyonu. Dis. 2002; 2 :1. doi: 10.1186/1471-2334-2-1. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          119. Dorko E., Baranová Z., Jenča A., Kizek P., Pilipčinec E., Tkáčiková L. Diabetes mellitus ve kandidiyazlar. Folia Mikrobiol. 2005; 50 :255–261. doi: 10.1007/BF02931574. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          120. Dicle O., Parmaksızoğlu B., Gürkan A., Tuncer M., Demirbaş A., Yılmaz E. Güney Türkiye'de 401 renal transplant alıcısında cilt enfeksiyonları—PubMed. Tecrübe. klinik nakil 2009; 7 :133–136. [ PubMed ] [ Google Akademik ]
          121. Bassetti M., Righi E., Costa A., Fasce R., Molinari MP, Rosso R., Pallavicini FB, Viscoli C. Yoğun bakımda nozokomiyal kandidemide epidemiyolojik eğilimler. BMC Enfeksiyonu. Dis. 2006; 6:21 . doi: 10.1186/1471-2334-6-21. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          122. Xu J., Schwartz K., Bartoces M., Monsur J., Severson RK, Sobel JD Antibiyotiklerin vulvovajinal kandidiyazis üzerindeki etkisi: Bir metronet çalışması. J. Am. Yönetim Kurulu Ailesi Med. 2008; 21 :261–268. doi: 10.3122/jabfm.2008.04.070169. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          123. Seelig MS Candida enfeksiyonlarının patogenezinde antibiyotiklerin rolü. Am. J.Med. 1966; 40 :887–917. doi: 10.1016/0002-9343(66)90204-X. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          124. Baker KF, Isaacs JD İmmün aracılı enflamatuar hastalıklar için yeni tedaviler: Romatoid artrit, spondiloartrit, sistemik lupus eritematozus, sedef hastalığı, Crohn hastalığı ve ülseratif kolitte kullanımlarından ne öğrenebiliriz? Ann. rom. Dis. 2018; 77 :175–187. doi: 10.1136/annrheumdis-2017-211555. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          125. Kuwabara T., Ishikawa F., Kondo M., Kakiuchi T. Enflamatuar Otoimmün Hastalıklarda IL-17 ve İlgili Sitokinlerin Rolü. medyat. İltihap 2017; 2017 tarihi: 10.1155/2017/3908061. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          126. Beringer A., ​​Noack M., Miossec P. IL-17 in Chronic Inflammation: From Discovery to Targeting. Trendler Mol. Med. 2016; 22 :230–241. doi: 10.1016/j.molmed.2016.01.001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          127. Conti HR, Gaffen SL IL-17–Fırsatçı Fungal Patojen Candida albicans'a Aracılı Bağışıklık. J. Immunol. 2015; 195 :780–788. doi: 10.4049/jimmunol.1500909. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          128. Lesher J. Derinin yaygın yüzeysel mantar enfeksiyonlarının oral tedavisi. J. Am. Acad. Dermatol. 1999; 40 :S31–S34. doi: 10.1016/S0190-9622(99)70395-6. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          129. Costa C., Dias PJ, Sá-Correia I., Teixeira MC Patojenik mantarlarda MFS çoklu ilaç taşıyıcıları: Gerçek klinik etkileri var mı? Ön. Fizyol. 2014; 5 :197. doi: 10.3389/fphys.2014.00197. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          130. Bhattacharya S., Sae-Tia S., Fries BC Candidiasis ve antifungal direnç mekanizmaları. antibiyotikler. 2020; 9 :312. doi: 10.3390/antibiyotikler9060312. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          131. Choukri F., Benderdouche M., Sednaoui P. Candida spp.'nin 200 yeni klinik izolatının in vitro duyarlılık profili. vulvovajinal kandidiyaz, imidazoller ve nistatin ajanlarının topikal antifungal tedavilerine. J. Mycol. Med. 2014; 24 :303–307. doi: 10.1016/j.mycmed.2014.05.001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          132. Sonthalia S., Agrawal M., Sehgal V. Topikal siklopiroks olamin %1: Eşsiz bir antifungali tekrar ziyaret etmek. Hint Dermatol. Çevrimiçi J.2019 ; 10 :481. doi: 10.4103/idoj.IDOJ_29_19. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          133. Abrams B., Hanel H., Hoehler T. Siklopiroks olamin: Bir hidroksipiridin mantar önleyici madde. klinik Dermatol. 1991; 9 :471–477. doi: 10.1016/0738-081X(91)90075-V. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          134. Jandourek A., Brown P., Vazquez JA Candida tropicalis'in çok azole dirençli bir suşuna bağlı olarak toplum kökenli fungemi. klinik bulaştırmak. Dis. 1999; 29 :1583–1584. doi: 10.1086/313540. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          135. Vazquez JA, Sobel JD Anidulafungin: Yeni bir ekinokandin. klinik bulaştırmak. Dis. 2006; 43 :215–222. doi: 10.1086/505204. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          136. Avrupa İlaç Ajansı . Oral Ketokonazolün Oral Ketokonazol Faydasına İlişkin Pazarlama Yetkilerinin Askıya Alınması, Mantar Enfeksiyonlarında Karaciğer Hasarı Riskinden Daha Ağır Gelmez 25 Temmuz 2013, Avrupa İlaç Ajansı Beşeri Tıbbi Ürünler Komitesi. Avrupa İlaç Ajansı; Londra, Birleşik Krallık: 2013. [ Google Scholar ]
          137. Gupta A. Sistemik antifungal ajanlar. İçinde: Wolverton S., editör. Kapsamlı Dermatolojik İlaç Tedavisi. Saunder; Philadelphia, PA, ABD: 2007. sayfa 101–112. [ Google Akademik ]
          138. Talapko J., Matijević T., Juzbašić M., Antolović-Požgain A., Škrlec I. Gümüşün Antibakteriyel Aktivitesi ve Diş Hekimliği, Kardiyoloji ve Dermatolojide Uygulaması. mikroorganizmalar. 2020; 8 :1400. doi: 10.3390/microorganisms8091400. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          139. Hassan A., Mansour K., Mahmoud H. Gümüş nanoparçacıkların (Ag-Nps) (bir metal modeli) Candida albicans tarafından biyosentezi ve bazı mantar patojenleri (Trichophyton mentagrophytes ve Candida albicans) üzerindeki antifungal aktivitesi NY Sci . J.2013 ; 6 :27–34. [ Google Akademik ]
          140. Choi JS, Lee JW, Shin UC, Lee MW, Kim DJ, Kim SW Candida türlerinde biyofilm oluşumuna karşı lycopersicon esculentum kullanılarak sentezlenen gümüş nanopartiküllerin inhibitör aktivitesi. nanomalzemeler. 2019; 9 :1512. doi: 10.3390/nano9111512. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          141. Pappas PG, Lionakis MS, Arendrup MC, Ostrosky-Zeichner L., Kullberg BJ Invasive candidiasis. Nat. Rev Dis. Prim. 2018; 4 :1–20. doi: 10.1038/nrdp.2018.26. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          142. Jabra-Rizk MA, Kong EF, Tsui C., Nguyen MH, Clancy CJ, Fidel PL, Noverr M. Candida albicans patogenezi: Konak mikrop hasar tepkisi çerçevesine uygunluk. bulaştırmak. Bağışıklık. 2016; 84 :2724–2739. doi: 10.1128/IAI.00469-16. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          143. Rosati D., Bruno M., Jaeger M., Ten Oever J., Netea MG Tekrarlayan Vulvovajinal Kandidiyazis: İmmünolojik Bir Perspektif. mikroorganizmalar. 2020; 8 :144. doi: 10.3390/microorganisms8020144. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          144. Gonzalez-Lara MF, Ostrosky-Zeichner L. İnvaziv Kandidiyazis. Semin. Nefes al. kritik Bakım Med. 2020; 41 :3–12. doi: 10.1055/s-0040-1701215. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          145. Yapar N. İnvaziv kandidiyaz için epidemiyoloji ve risk faktörleri. orada. klinik Risk Yönetimi 2014; 10 :95–105. doi: 10.2147/TCRM.S40160. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          146. Kauffman CA, Vazquez JA, Sobel JD, Gallis HA, McKinsey DS, Karchmer AW, Sugar AM, Sharkey PK, Wise GJ, Mangi R., et al. Hastanede yatan hastalarda funguryanın prospektif çok merkezli sürveyans çalışması. klinik bulaştırmak. Dis. 2000; 30 :14–18. doi: 10.1086/313583. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          147. Ang BSP, Telenti A., King B., Steckelberg JM, Wilson WR İdrar yolu kaynağından kandidemi: Mikrobiyolojik yönler ve klinik önemi. klinik bulaştırmak. Dis. 1993; 17 :662–666. doi: 10.1093/clinids/17.4.662. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          148. Haron E., Vartivarian S., Anaissie E., Dekmezian R., Bodey G. Primer Candida pneumonia. Büyük bir kanser merkezinde deneyim ve literatürün gözden geçirilmesi. İlaç. 1993; 72 :137–142. doi: 10.1097/00005792-199305000-00001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          149. Kontoyiannis DP, Reddy BT, Torres HA, Luna M., Lewis RE, Tarrand J., Bodey GP, Raad II Kanserli hastalarda akciğer kandidiyazı: Bir otopsi çalışması. klinik bulaştırmak. Dis. 2002; 34 :400–403. doi: 10.1086/338404. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          150. Barton M., Shen A., O'Brien K., Robinson JL, Davies HD, Simpson K., Asztalos E., Langley J., Le Saux N., Sauve R., et al. Aşırı düşük doğum ağırlıklı bebeklerde erken başlangıçlı invaziv kandidiyazis: Perinatal edinim kötü sonucu öngörür. klinik bulaştırmak. Dis. 2017; 64 :921–927. doi: 10.1093/cid/cix001. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          151. Schnabel RM, Linssen CF, Guion N., Van Mook WN, Bergmans DC Yoğun bakım ünitesinde Candida pnömonisi? Forum Infect'i açın. Dis. 2014; 1 doi: 10.1093/ofid/ofu026. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          152. Johnson MD, Perfect JR Kemiklerin ve eklemlerin mantar enfeksiyonları. Curr. bulaştırmak. Dis. 2001 ; 3 :450–460. doi: 10.1007/BF03160470. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          153. Miller DJ, Mejicano GC Candida türlerine bağlı vertebral osteomiyelit: Olgu sunumu ve literatür taraması. klinik bulaştırmak. Dis. 2001; 33 :523–530. doi: 10.1086/322634. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          154. Gamaletsou MN, Kontoyiannis DP, Sipsas NV, Moriyama B., Alexander E., Roilides E., Brause B., Walsh TJ Candida osteomyelit: Analysis of 207 pediatrik ve erişkin vaka (1970-2011) Clin . bulaştırmak. Dis. 2012; 55 :1338–1351. doi: 10.1093/cid/cis660. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          155. Shoham S., Nucci M., Walsh TJ Mukokutanöz ve Derin İnvaziv Kandidiyazis. İçinde: Guerrant RL, Walker DH, Weller PF, editörler. Tropikal Bulaşıcı Hastalıklar. Elsevier Inc.; Boston, MA, ABD: 2011. sayfa 589–596. [ Google Akademik ]
          156. Weitkamp JH, Nania JJ Bulaşıcı Hastalıklar. İçinde: Fenichel GM, editör. Yenidoğan Nörolojisi. Elsevier Inc.; Boston, MA, ABD: 2007. sayfa 109–141. [ Google Akademik ]
          157. Mamtani SS, Aljanabi NM, Gupta Rauniyar RP, Acharya A., Malik BH Candida Endocarditis: A Review of the Pathogenesis, Morphology, Risk Factors, and Management of an Emerging andcidid Condition. Curius. 2020; 12 doi: 10.7759/cureus.6695. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          158. Baddley JW, Benjamin DK, Patel M., Miró J., Athan E., Barsic B., Bouza E., Clara L., Elliott T., Kanafani Z., et al. Candida enfektif endokardit. Avro. J. Clin. Mikrobiyoloji. bulaştırmak. Dis. 2008; 27 :519–529. doi: 10.1007/s10096-008-0466-x. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          159. Yazar C., Shokohi T., Reza Aghili S., Ali Boroumand M., Hashemi Fesharaki S., Salmanian B. Candida membranaefaciens'e bağlı Intravenous Catheter-Associated Candidemia: The First Iran Case. J. Tahran Üniv. Kalp Merkezi. 2015; 10 :101–105. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
          160. Logan C., Martin-Loeches I., Bicanic T. Kritik bakımda invaziv kandidiyazis: Zorluklar ve gelecekteki yönler. Yoğun Bakım Med. 2020; 46 :2001–2014. doi: 10.1007/s00134-020-06240-x. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          161. Calandra T., Roberts JA, Antonelli M., Bassetti M., Vincent JL Yoğun bakım ünitesinde invaziv kandidiyazın teşhisi ve yönetimi: Eski bir düşmana güncellenmiş bir yaklaşım. kritik Bakım. 2016; 20 :125. doi: 10.1186/s13054-016-1313-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          162. Beardsley J., Halliday CL, Chen SCA, Sorrell TC Antifungal ilaç direncinin ortaya çıkışına yanıt verme: Tezgahtan ve yatak başından perspektifler. Geleceğin Mikrobiyolu. 2018; 13 :1175–1191. doi: 10.2217/fmb-2018-0059. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          163. Wiederhold NP Antifungal direnç: Mevcut eğilimler ve mücadele için gelecekteki stratejiler. bulaştırmak. Uyuşturucu Direnci. 2017; 10 :249–259. doi: 10.2147/IDR.S124918. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          164. Costa-de-Oliveira S., Rodrigues AG Candida albicans Antifungal Direnç ve Kan Dolaşımı Enfeksiyonlarında Tolerans: Triad Maya-Konak-Antifungal. mikroorganizmalar. 2020; 8 :154. doi: 10.3390/microorganisms8020154. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          165. Siddharthan T., Karakousis PC, Checkley W. Sepsisli kritik hastalarda ampirik antifungal tedavi. JAMA J. Am. Med. Doç. 2016; 316 :1549–1550. doi: 10.1001/jama.2016.13801. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          166. Eschenauer GA, Kwak EJ, Humar A., ​​Potoski BA, Clarke LG, Shields RK, Abdel-Massih R., Silveira FP, Vergidis P., Clancy CJ, et al. Karaciğer Nakli Alıcıları Arasında Hedefe Yönelik Evrensel Antifungal Profilaksiye Karşı. Am. J. Nakil. 2015; 15 :180–189. doi: 10.1111/ajt.12993. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          167. Hsu JF, Lai MY, Lee CW, Chu SM, Wu IH, Huang HR, Lee IT, Chiang MC, Fu RH, Tsai MH Çocuklarda ve yenidoğanlarda invaziv kandidiyazın insidansının, klinik özelliklerinin ve sonuçlarının karşılaştırılması. BMC Enfeksiyonu. Dis. 2018; 18 :194. doi: 10.1186/s12879-018-3100-2. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          168. Badiee P. Mantar enfeksiyonlarının teşhisi için insan vücut sıvılarının değerlendirilmesi. Biyomed. Res. Int. 2013; 2013 doi: 10.1155/2013/698325. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          169. Cobo F., Rodríguez-Granger J., Sampedro A., Aliaga-Martínez L., Navarro-Marí JM Candida Prostetik Eklem Enfeksiyonu. Tedavi Yöntemlerinin İncelenmesi. J. Kemik Jt. bulaştırmak. 2017; 2 :114–121. doi: 10.7150/jbji.17699. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          170. Pfaller MA, Castanheira M. Nozokomiyal kandidiyazis: Antifungal yönetim ve hızlı teşhisin önemi. Med. Mikol. 2016; 54 :1–22. doi: 10.1093/mmy/myv076. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          171. Tissot F., Agrawal S., Pagano L., Petrikkos G., Groll AH, Skiada A., Lass-Flörl C., Calandra T., Viscoli C., Herbrecht R. Lösemi ve hematopoietik kök hücre nakli hastalarında invaziv kandidiyazis, aspergilloz ve mukormikoz tedavisi için ECIL-6 kılavuzları. Hematolojik. 2017; 102 :433–444. doi: 10.3324/haematol.2016.152900. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          172. Bow EJ, Evans G., Fuller J., Laverdière M., Rotstein C., Rennie R., Shafran SD, Sheppard D., Carle S., Phillips P., et al. Yetişkinlerde invaziv kandidiyazis için Kanada klinik uygulama kılavuzları. Olabilmek. J. Bulaş. Dis. Med. Mikrobiyoloji. 2010; 21 doi: 10.1155/2010/357076. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          173. Wang Y., McGuire TM, Hollingworth SA, Dong Y., Van Driel ML Nötropenik olmayan kritik hastalarda invaziv kandidiyaz için antifungal ajanlar: Kılavuzlar ne öneriyor? Int. J. Bulaş. Dis. 2019; 89 :137–145. doi: 10.1016/j.ijid.2019.10.016. [ PubMed ] [ CrossRef ] [ Google Scholar ]
          174. Patterson TF, Thompson GR, Denning DW, Fishman JA, Hadley S., Herbrecht R., Kontoyiannis DP, Marr KA, Morrison VA, Nguyen MH, et al. Aspergillozun teşhisi ve yönetimi için uygulama kılavuzları: Amerika bulaşıcı hastalıklar derneği tarafından 2016 güncellemesi. klinik bulaştırmak. Dis. 2016; 63 :e1–e60. doi: 10.1093/cid/ciw326. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          175. Johnson MD, Perfect JR Antifungal kombinasyon tedavisinin kullanımı: Ajanlar, sıralama ve zamanlama. Curr. Mantar Enfeksiyonu. 2010 ; 4 :87–95. doi: 10.1007/s12281-010-0018-6. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
          Journal of Fungi'den makaleler burada Multidisipliner Dijital Yayıncılık Enstitüsü'nün (MDPI) izniyle

          Yorum yap


          • #6
            Candida albicans ve Gelişen Non- albicans Candida Türlerinde Azol Antifungal Direnci

            Sarah G. Whaley , 1 Elizabeth L. Berkow , 1, † Jeffrey M. Rybak , 1 Andrew T. Nishimoto , 1 Katherine S. Barker , 1 ve P. David Rogers 1, 2, *
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            1 Klinik Eczacılık Bölümü, Eczacılık Fakültesi, Tennessee Üniversitesi Sağlık Bilimleri Merkezi, Memphis, TN, ABD
            2 Pediatrik Farmakokinetik ve Tedavi Merkezi, Tennessee Üniversitesi Sağlık Bilimleri Merkezi, Memphis, TN, ABD
            Düzenleyen: Dominique Sanglard, Lozan Üniversitesi, İsviçre
            İnceleyen: Miguel Cacho Teixeira, Universidade de Lisboa, Portekiz; Siddharth Kaushal Tripathi, Mississippi Üniversitesi, ABD; Sudhanshu Shukla, Haryana Amity Üniversitesi, Hindistan
            *Yazışma: P. David Rogers ude.cshtu@3sregorp
            Bu makale Frontiers in Microbiology dergisinin bir bölümü olan Antimikrobiyaller, Direnç ve Kemoterapi'ye gönderilmiştir.
            †Mevcut Adres: Elizabeth Berkow, Fungal Servis Ekibi, Mikotik Hastalıklar Şubesi, Hastalık Kontrol ve Önleme Merkezleri, Atlanta, GA, ABD
            Git:

            Soyut
            Sınırlı antifungal silahlar içinde, azol antifungalleri, Candida enfeksiyonlarını tedavi etmek için en sık kullanılan sınıftır . Flukonazol gibi azol antifungalleri, ucuz olmaları, sınırlı toksisite göstermeleri ve oral uygulama için mevcut olmaları nedeniyle birçok Candida enfeksiyonu için sıklıkla tercih edilen tedavi yöntemidir. Bununla birlikte, birkaç Candida türü arasında azol antifungallerine karşı içsel ve gelişmiş direnç olduğuna dair kapsamlı belgeler bulunmaktadır . Azole dirençli Candida izolatlarının klinik ortamda sıklığı arttıkça, Candida'nın tedavisi için azol antifungal sınıfını hem korumak hem de geliştirmek için bu tür direnç mekanizmalarının aydınlatılması esastır.enfeksiyonlar. Bu derleme, C. albicans'ın yanı sıra gelişmekte olan albicans dışı Candida türleri C. parapsilosis, C. tropicalis, C. krusei ve C. glabrata'nın neden olduğu enfeksiyonlarda azol direncini incelemekte ve özellikle bu mantar türlerinde azol direncinin moleküler temeline ilişkin mevcut anlayışı açıklamaktadır.

            Anahtar Kelimeler: antifungal, azol, direnç, Candida albicans , Candida parapsilosis , Candida glabrata , Candida tropicalis , Candida krusei
            Git:

            giriiş
            Candida albicans ve C. glabrata, C. parapsilosis, C. tropicalis ve C. krusei gibi yeni ortaya çıkan albicans dışı Candida (NAC) türleri , yaygın kan dolaşımı ve derin doku enfeksiyonlarının yanı sıra oral ve vajinal mukozanın yüzeysel enfeksiyonlarına neden olabilir. Tür tutulumu, enfeksiyon bölgesine ve coğrafyaya göre değişir. Amerika Birleşik Devletleri (Cleveland ve diğerleri, 2015 ), Avrupa (Klingspor ve diğerleri, 2015 ) ve Orta Doğu'daki (Sharifzadeh ve diğerleri, 2013 ) epidemiyolojik çalışmaların kanıtladığı gibi, Candida enfeksiyonlarına çoğunlukla C. albicans neden olur . Tüm NAC türleri arasında C. glabrataKuzey Amerika'da (Sobel, 2010 ; Azie ve diğerleri, 2012 ; Pfaller ve diğerleri, 2014b ) ve Kuzey Avrupa'da (Lortholary ve diğerleri, 2014 ; Milazzo ve diğerleri, 2014 ) ve ayrıca Latin Amerika dışında incelenen diğer coğrafi bölgelerde (Pfaller ve diğerleri, 2010 ) kandidemili hastalardan en yaygın olarak izole edilir . C. glabrata aynı zamanda vulvovajinal kandidiyaza (VVC) neden olan ajan olarak bulunan en yaygın NAC türüdür (Corsello ve diğerleri, 2003 ; Holland ve diğerleri, 2003 ; Richter ve diğerleri, 2005 ; Vermitsky ve diğerleri, 2008 ; Mahmoudi Rad ve diğerleri, 2012 )) ve kandidüri (Sobel ve diğerleri, 2000 ; Kauffman, 2005 ). Bazı hasta popülasyonlarında, örneğin hematolojik malignitesi olan hastalarda kandidemi ve diyabetik hastalarda VVC, C. glabrata , C. albicans'tan bile daha yaygındır (Goswami ve diğerleri, 2006 ; Ray ve diğerleri, 2007 ; Hachem ve diğerleri, 2008 ). C. parapsilosis , bebeklerde ve yenidoğanlarda tüm fungemilerin %17-50'sinden sorumlu olduğu için pediatrik popülasyona yönelik tehdidiyle iyi bilinir (Abi-Said ve diğerleri, 1997; Krcmery ve diğerleri, 1999 ). C. parapsilosis ayrıca sadece C. albicans'tan sonra ikinci sıradadır.%42 ila %65 arasında ölüm oranları ile Candida endokarditinin bir nedeni olarak insidanstadır (Weems, 1992 ; Garzoni ve ark., 2007 ). Asya-Pasifik bölgesinde C. tropikalis'in Candida izolatlarının %20-45'ini oluşturduğu bildirilmiştir (Kothari ve Sagar, 2009 ; Pfaller ve diğerleri, 2010 ). Akut miyeloid lösemi gibi hematolojik hastalıkları olan hastalarda daha yüksek prevalans bildiren bazı çalışmalarla C. tropikalis enfeksiyonları yaygın olarak malignite ile ilişkilidir (Weinberger ve diğerleri, 2005 ; Nucci ve Colombo, 2007 ; Tang ve diğerleri, 2014 , 2015 ); Cornely ve diğerleri, 2015 ). Bu popülasyonlarda C. tropikalis kandidemi ile ilişkili ölüm oranı maalesef %30 ila %70 arasında değişmektedir ve en yüksek oranlar en yaygın olarak yaşlılarda gözlenmektedir (Weinberger ve diğerleri, 2005; Nucci ve Colombo, 2007; Morii ve diğerleri, 2014; Cornely ve diğerleri , 2015 ; Wang ve diğerleri , 2015 ) . C. krusei, Amerika Birleşik Devletleri'nde izole edilen NAC türlerinin yaklaşık %2,7'sini oluşturan, istilacı kandidiyazis ve kandidemi ile ilişkili dördüncü en yaygın NAC türüdür (Pfaller ve diğerleri, 2014b ) . Ayrıca C. krusei sayısıbu tür enfeksiyonlara karışan izolatlar zamanla artmıştır (Pfaller ve diğerleri, 2014a , b ). Özellikle hematolojik maligniteleri ve kemik iliği nakli olan hastaların C. krusei enfeksiyonu riskinin arttığı gösterilmiştir (Merz ve diğerleri, 1986 ; Wingard ve diğerleri, 1991 ; Pfaller ve diğerleri, 2008 ).

            Git: Candida enfeksiyonlarında azol direnci
            Candida enfeksiyonlarını tedavi etmek için kullanılan cephaneliği içeren birkaç bileşik sınıfı vardır . Polienler, azoller, ekinokandinler, nükleosit analogları ve alilaminler, Candida türlerinin hassasiyetine ve enfeksiyonun tipine ve bölgesine bağlı olarak değişen etkinlikle kullanılır (Pfaller ve diğerleri, 2010; Pfaller ve Diekema , 2012b ; Pfaller ve diğerleri, 2013 ; Pappas ve diğerleri, 2016 ). Çoğu C. albicans enfeksiyonu için kullanılan en sık reçete edilen antifungal , azol antifungal sınıfının bir üyesi olan flukonazoldür (Pfaller ve diğerleri, 2010 ). Azoller, ERG11 tarafından kodlanan 14-α-sterol demetilazı inhibe edermantara özgü membran sterol ergosterolün biyosentezinde yer alan bir enzim olan gen. Bazı NAC türleri azollere içsel direnç gösterdiğinden, kullanımları muhtemelen bu NAC türlerinin neden olduğu enfeksiyonların daha sık görülmesine katkıda bulunan bir faktördür (Oxman ve diğerleri, 2010; Lortholary ve diğerleri, 2011; Fothergill ve diğerleri , 2014 ) . Ayrıca, birçok çalışma Candida'nın azol antifungallere karşı yüksek düzeyde direnç geliştirme yeteneğini belgelemiştir (Oxman ve diğerleri, 2010 ; Lortholary ve diğerleri, 2011 ). Candida türleri için flukonazol MİK aralıklarının ve epidemiyolojik eşik değerlerinin bir derlemesi Tablo'da sunulmaktadır.​Tablo 11. tablo 1


            Candida türleri için flukonazol MİK aralıkları ve epidemiyolojik eşik değerleri .
            C. albicans (5265) 0,06 – ≥128 (0,12) 3.5
            C. glabrata (7538) 0,12 – ≥128 (4) 7.8
            C. krusei (1075) 0,25 – ≥128 (16) 96.6
            C. parapsilosis (6023) 0,06 – ≥128 (0,5) 3.4
            C. tropikalis (3748) 0,06 – ≥128 (0,25) 2.3
            Ayrı bir pencerede aç
            Tüm değerler mg/L cinsindendir .

            (Klinik ve Laboratuvar Standartları Enstitüsü, 2012 ; Espinel-Ingroff ve diğerleri, 2014 ) .

            C. albicans'ın neden olduğu enfeksiyonlar, enfeksiyonun türüne bağlı olarak değişen seviyelerde flukonazol direnci ile ilişkilidir. Kandidemik hastalardan alınan C. albicans izolatları, azol direnci insidansının en düşük olduğu (%0-5) (Diekema ve diğerleri, 2012 ; Pfaller ve diğerleri, 2015 ; Ying ve diğerleri, 2015 ). Orofaringeal kandidiyazis (OPC) kaynaklı C. albicans izolatlarında flukonazol direnci insidansı daha yüksektir ve önceki flukonazol tedavisine ve önceki OPC enfeksiyonlarına bağlıdır (Enwuru ve diğerleri, 2008 ; Berberi ve diğerleri, 2015 ). C. glabrata, Candida türleri arasında en yüksek azol direnci insidansına sahiptir.klinik izolatlar ve sınıfa en yeni eklenen izavukonazol (Castanheira ve diğerleri, 2014 ) dahil olmak üzere azol antifungal sınıfına içsel azalmış duyarlılık sergiler (Oxman ve diğerleri, 2010 ; Pfaller ve diğerleri, 2014b ). C. glabrata ayrıca azol antifungallere maruz kaldıktan sonra yüksek düzeyde direnç geliştirebilir (Fidel ve diğerleri, 1999 ; Lee ve diğerleri, 2009 ) ve azol profilaksisi alan hastalardan ani enfeksiyonlarda izole edilen en yaygın türlerden biridir (Bennett ve diğerleri, 2004 ; Imhof ve diğerleri, 2004 ; Hachem ve diğerleri, 2008 )). C. glabrata'nın klinik olarak geri kazanılan çoklu ilaca dirençli izolatlarının sayısı artan bir endişe kaynağıdır (Manzano-Gayosso ve diğerleri, 2003 ; Chapeland-Leclerc ve diğerleri, 2010 ; Hull ve diğerleri , 2012 ; Pfaller ve diğerleri, 2012a ; Cho ve diğerleri, 2015 ). Asya-Pasifik bölgesinde, C. tropikalis'teki flukonazol direnci , %0'dan %83'e kadar değişmektedir (Yang ve diğerleri, 2004 , 2008 ; Yoo ve diğerleri, 2009 ). C. parapsilosis yayılmış enfeksiyonlarda dünya çapında flukonazol direnci insidansı %2 ila %5 arasında değişmektedir (Chen ve ark., 2006; Marti-Carrizosa ve diğerleri, 2014 ; Pfaller ve diğerleri, 2015 ). C. krusei , flukonazole içsel direnç gösterdiğinden, artan enfeksiyon oranının flukonazol profilaksisi veya önceki tedavi ile ilişkili olup olmadığı konusunda bazı tartışmalar vardır (Hope ve diğerleri, 2002; Lin ve diğerleri, 2005 ; Blot ve diğerleri, 2006 ; Gong ve diğerleri, 2016 ). Açıkçası, içsel ve yüksek seviyeli azol direncinin gelişimini sağlayan moleküler mekanizmaların anlaşılması garanti edilir.

            Git: Azol antifungal direnç mekanizmaları
            Candida albicans
            Candida'da azol antifungallere karşı direnç (Şekilde özetlenmiştir)​Şekil 1)1) en kapsamlı olarak C. albicans'ta çalışılmıştır . Bu türde tanımlanan bir direnç mekanizması, ERG11'de nokta mutasyonlarının varlığıdır . Önceki çalışmalar, flukonazol duyarlılığının azalmasına neden olan amino asit sübstitüsyonlarını tanımlamış ve bu kritik alelik varyasyonların birçoğunun Erg11p içindeki üç "sıcak nokta" bölgesinde kümelendiğini kaydetmiştir (Marichal ve diğerleri, 1999 ) . Son zamanlarda, 63 flukonazole dirençli C. albicans klinik izolatı, ERG11 alelleri içindeki mutasyonlar açısından incelendi ve 55'inin, amino asit ikameleriyle sonuçlanan en az bir mutasyon taşıdığı bulundu ve bu tür dokuz amino asit ikamesi yeni tahmin edildi (Flowers ve diğerleri, 2015) .). Duyarlı bir arka planda ifade edildiğinde flukonazol duyarlılığının azalmasıyla sonuçlanan sübstitüsyonların moleküler modellemesi, mutasyonların ya öngörülen katalitik bölgede, mantara özgü dış halkada ya da potansiyel olarak halka ile veya heme yakınında etkileşime giren proksimal yüzeyde kümelendiğini ortaya çıkardı. Ek olarak, 23 C. albicans klinik izolatlarında tanımlanan mutasyonları ortaya çıkarmak için vahşi tip ERG11'in sahaya yönelik mutajenezini içeren bir çalışma, bu mutasyonlardan dokuzunun flukonazol direncinde artışla sonuçlandığını gösterdi (Xiang ve diğerleri, 2013 ). Amino asit ikamelerinden beşinin, Erg11p'nin aktif bölgesinde veya yakınında olduğu tahmin edildi.

            Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı fmicb-07-02173-g0001.jpg'dir.

            Şekil 1
            Candida türlerinde belgelenmiş flukonazol direnç mekanizmalarının karşılaştırılması . (A) Erg3 inaktivasyonu, maya zarında alternatif sterollerin kullanılmasıyla sonuçlanır. (B) Eksojen sterollerin alımı, flukonazolün endojen sterol üretimi inhibisyonunu önlemeye yardımcı olur. Hem (C) ATP bağlayıcı kaset akış pompalarının hem de (D) ana kolaylaştırıcı üst aile taşıyıcılarının artan üretimi, azollerin hücre içi birikimini azaltır. (E) Flukonazolün türe özgü Erg11'e doğal olarak düşük afinitesi, flukonazolün proteini inhibe etme potansiyelini azaltabilir. (F) Erg11 proteininin artan ifadesi, azol aktivitesinin üstesinden gelmeye yardımcı olabilir ve (G)anöploidi, azol maruziyetine genetik adaptasyonu destekleyebilir. (H) ERG11'deki mutasyonlar, flukonazol bağlanması için azaltılmış afiniteye sahip proteinlerle de sonuçlanabilir.

            C. albicans'ta başka bir flukonazol direnci mekanizması, çinko küme transkripsiyonel düzenleyici Upc2p'yi kodlayan gendeki aktive edici mutasyonlar nedeniyle artan ERG11 ekspresyonudur . C. albicans Upc2, Saccharomyces cerevisiae ERG gen regülatör çifti Upc2/Ecm22'nin bir homologudur . Başlangıçta, Upc2'nin C. albicans'ta flukonazol direncine dahil olması, Δ upc2 C. albicans suşlarının azollere karşı oldukça hassas olduğu gösterilirken, Upc2'yi aşırı eksprese edenlerin flukonazol direncini arttırdığı gösterildi (MacPherson ve diğerleri, 2005 ) . Eşleştirilmiş bir flukonazol duyarlı ve dirençli C. albicans setini inceleyen ileri çalışmalarFlukonazol direncinin ilaç akış pompalarının aşırı ekspresyonu ile ilişkili olmadığı klinik izolatlar, bir UPC2 alelinde SNP'ler ve dirençli izolatta birkaç ERG geninin ve UPC2'nin aşırı ekspresyonunu ortaya çıkardı (Dunkel ve diğerleri, 2008a ). UPC2 alellerinin flukonazole duyarlı suşlarda ekspresyonu , flukonazol direncinin artmasına neden oldu (Dunkel ve diğerleri, 2008a ; Heilmann ve diğerleri, 2010 ; Hoot ve diğerleri, 2011 ). İlginç bir şekilde, ERG11'i aşırı ifade eden klinik C. albicans izolatlarının üç ek eşleştirilmiş seti tarif edilmiştir;Her bir çiftteki duyarlı ve dirençli izolatlar arasındaki UPC2 (Heilmann ve diğerleri, 2010 ), ERG11 yukarı regülasyonunun diğer mekanizmalarının var olduğunu gösterir. Bu çalışmalar , flukonazol direnci bağlamında ERG11 ifadesinin düzenleyicisi olarak Upc2p'nin belirlenmesinde önemli olmakla birlikte , UPC2 aracılı flukonazol direncinin nadir görülen bir durum olduğu varsayılmıştır. Bununla birlikte, 63 flukonazol dirençli C. albicans klinik izolatını içeren büyük bir çalışma, bu izolatlardan 47'sinin ERG11'i en az 2 kat fazla eksprese ettiğini gösterdi (Flowers ve diğerleri, 2012 ). Bunlardan yirmi dokuzu ERG11- aşırı eksprese eden izolatlar, UPC2'de bir yanlış anlamlı mutasyon içeriyordu ve sekiz tekli amino asit ikamesi, UPC2 alellerinden aydınlatıldı . Bu alellerden yedisinin, artan ERG11 ekspresyonu, artan ergosterol üretimi ve azalmış flukonazol duyarlılığı ile ilişkili olduğu bulundu .

            C. albicans'taki diğer iki flukonazol direnci mekanizması, ilaç akış pompaları Mdr1p ve Cdr1p/Cdr2p'nin aşırı ekspresyonunu içerir. TAC1 ( C DR genlerinin transkripsiyonel aktivatörü ) , regulonu ATP bağlayıcı kaset (ABC) taşıyıcı kodlayan genler CDR1 ve CDR2 (Coste ve diğerleri, 2004 ) tarafından ayırt edilen bir çinko küme transkripsiyon faktörüdür. TAC1 regulon ekspresyonunun aktivasyonu, TAC1'in TAC1 tarafından düzenlenen genlerin promotörlerinde bulunan DRE'ye (ilaç yanıt elemanı) bağlanması yoluyla gerçekleşir (Coste ve diğerleri, 2004).; Liu ve arkadaşları, 2007 ). En az dokuz hiperaktif TAC1 aleli tanımlanmıştır (Coste ve diğerleri, 2007 ) ve bu alellerin keşfedildiği izolatlarla ilişkili flukonazol minimum inhibe edici konsantrasyonlar (MIC), TAC1'in, TAC1-heterolog suşlarda ara flukonazol MIC ve heterozigotluk kaybı üzerine yüksek flukonazol MIC ile sonuçlanan kodominans gösterdiğini ortaya koymuştur (Coste ve diğerleri, 2006 , 2). 007 ). TAC1, ERG11 ile Chr5'in sol kolunda bulunduğundan , hiperaktif TAC1 ve mutasyona uğramış ERG11 varlığında bu tür heterozigotluk kaybıyüksek düzeyde azol direnci ile sonuçlanır (Coste ve diğerleri, 2007 ; Selmecki ve diğerleri, 2008 ).

            Mdr1p, genellikle doğal tip C. albicans suşlarında tespit edilemeyen seviyelerde eksprese edilen , benomil, diamid ve hidrojen peroksit varlığında indüklenen ve bazı flukonazol dirençli C. albicans izolatlarında yapısal olarak aşırı eksprese edilen bir ana kolaylaştırıcı üst aile (MFS) akış pompasıdır (Alarco ve Raymond, 1999 ). Çoklu ilaca direnç düzenleyici 1 olan MRR1 , flukonazole dirençli izolatların MDR1'i aşırı eksprese ettiği eşleştirilmiş izolat setlerinin transkriptomlarının karşılaştırılmasıyla tanımlandı (Morschhäuser ve diğerleri, 2007 ). MRR1'in bozulmasıbu dirençli izolatlarda flukonazol MİK'de bir azalmaya yol açarken, mutant allellerin her birinin tek tek doğal MRR1 lokusunda vahşi tip flukonazole duyarlı bir arka plana dahil edilmesi, oluşturulan suşa flukonazol direnci kazandırdı . Başka bir çalışma, MDR1 aracılı flukonazol direncindeki ek MRR1 alelik varyasyonlarını inceledi (Dunkel ve diğerleri, 2008b ). Çoğu durumda dirençli izolatlar/suşlar , mitotik rekombinasyon ve kromozom kaybına bağlı fonksiyon kazanımı mutasyonlarını içeren MRR1 aleli için homozigottu .

            C. albicans'ta azol direncinin daha az yaygın bir mekanizması, ergosterol biyosentez enzimi sterol Δ 5,6 desatürazı kodlayan ERG3 geninin etkisizleştirilmesidir . Erg3p, yoldaki son adımlardan birini katalize eder ve ayrıca azol tedavisi sırasında biriken toksik olmayan 14a-metillenmiş sterol ara ürünlerini toksik sterol 14a-metilergosta-8,24(28)-dien-3β,6a-diole dönüştürür. Bu nedenle, ERG3 geninin etkisizleştirilmesi veya silinmesi , bu tür toksik sterollerin sentezlenmesini önler. Sadece bir avuç klinik C. albicans izolatı, ERG3 inaktivasyonuna bağlı azol direncini belgelemiştir (Kelly ve diğerleri, 1997 ; Nolte ve diğerleri, 1997); Miyazaki ve diğerleri, 1999 ; Chau ve diğ., 2005 ; Martel ve diğerleri, 2010 ; Morio ve diğerleri, 2012 ).

            Aneuploidi , karşılaştırmalı genom hibridizasyonu ile gösterildiği gibi C. albicans'ta azol direncinde bir rol oynar (Selmecki ve diğerleri, 2006 ). Daha önce ima edildiği gibi, azole dirençli suşlarda bulunan yaygın bir anöploidi, Chr5'i içerir. Benzer şekilde, azole dirençli C. albicans'ta heterozigotluk kaybının (LOH) meydana geldiği gösterilmiştir (Coste ve diğerleri, 2006 ). Azole duyarlı ve dirençli C. albicans izolatlarının eşleştirilmiş bir setinde TAC1'in incelenmesi , duyarlı izolatın iki vahşi tip TAC1 aleli barındırdığını ortaya çıkardı.dirençli izolat, tek bir nükleotit polimorfizminin (SNP) aktive edici bir amino asit ikamesine (N977D) dönüştürüldüğü alellerden yalnızca birini içerirken.

            Candida parapsilozu
            Azole direnci C. albicans'ta kapsamlı bir şekilde çalışıldığı için , C. parapsilosis'teki azol direncinin mekanizmalarını aydınlatmaya yönelik girişimler, ortolog genlerin incelenmesini içermiş ve karışık sonuçlar vermiştir. Tek bir hastadan alınan altı izolatlık bir seri üzerinde yapılan bir çalışmada , flukonazole dirençli iki izolatta MRR1'de tek bir SNP bulundu (Zhang ve diğerleri , 2015 ) . Brezilya'daki bir hastanede kandidemi hastalarından dokuz flukonazole dirençli izolat elde edildi ve CDR1, MDR1 ve ERG11 aşırı ekspresyonunun yanı sıra ERG11 geninde SNP'lerin varlığı açısından incelendi (Souza ve diğerleri, 2015 ).). Dirençli izolatların her biri, bir Y132F amino asit ikamesine karşılık gelen tek bir homozigot SNP'ye (A395T) sahipti. Ek olarak, izolatların hiçbiri C. parapsilosis referans suşu ATCC22019 ile karşılaştırıldığında MDR1'i aşırı eksprese etmezken, bu izolatlarda CDR1 ekspresyonu referans suşa kıyasla 3,3 ila 9,2 kat, ERG11 ise 1,5 ila 7,4 kat arasında aşırı eksprese edildi. Bu çalışma , C. parapsilosis'te CDR1 ve ERG11 ile flukonazol direnci arasında bir ilişki olduğunu gösterse de , nedensel bir bağlantı kesin olarak kanıtlanmamıştır.

            Daha büyük ölçekli bir çalışmada, dört ABD kentindeki hastanelerden 30 dirençli izolat, 37 duyarlı doza bağımlı izolat ve 55 duyarlı izolat toplandı ve bunların ERG11 genleri sekanslandı (Grossman ve diğerleri , 2015 ) . İzolatların 54'ünde beş SNP tanımlandı; 17 dirençli izolatta bulunan amino asit ikamesi Y132F, yalnızca dirençli izolatlarda bulunan tek izolattı. Yirmi üç izolat, MRR1'de SNP'leri barındırdı . Tanımlanan dokuz SNP'den sadece üçü, yalnızca dirençli izolatlarda bulundu. Nispi MDR1 ifadesini ölçen kantitatif PCR, MDR1'de en az 5 kat artış ile dokuz izolat (altısı MRR1'de SNP'li, üçü yok) ortaya çıkardı.Duyarlı izolatların bir alt kümesinden elde edilen bileşik ifade düzeyi ile karşılaştırıldığında ifade. Bununla birlikte, ekspresyon seviyeleri, C. albicans'ta MDR1 aracılı azol direnci ile elde edilen seviyelerin bir kısmıydı . Mutasyona uğramış bir ERG11 alelinin dahil edilmesinin duyarlı bir izolatta azol direnci sağladığı kesin deneyler olmadan , bu sonuçlar düşündürücü olmaya devam ediyor.

            C. parapsilosis'te azol direncinin potansiyel mekanizmalarını genom çapında bir ölçekte tanımlama çabasıyla, flukonazol-, vorikonazol- ve posakonazol-dirençli suşlar deneysel olarak flukonazol, vorikonazol veya posakonazol içeren sıvı kültürde seri geçiş yoluyla geliştirildi (Silva ve diğerleri, 2011 ) . Flukonazole ve vorikonazole dirençli suşlar, hem flukonazole hem de vorikonazole karşı çapraz dirençliydi ve mikroarray analiziyle değerlendirildiğinde benzer transkripsiyonel profillere sahipti; bununla birlikte, posakonazole dirençli suş, diğer azollere karşı çapraz dirençli değildi ve belirgin bir transkripsiyon profiline sahipti. Flukonazole ve vorikonazole dirençli suşlarda diferansiyel olarak eksprese edilen genler arasında, stres yanıt geni GRP2 vardı., yanı sıra MDR1 ve MRR1 . ERG11, bu suşlarda diferansiyel olarak ifade edilmedi. Bununla birlikte, posakonazol dirençli suşta, ergosterol biyosentez genleri ERG11 ve ERG6 ile ERG gen düzenleyici UPC2 , diferansiyel olarak eksprese edilen genler arasındaydı.

            CpMRR1'in önceden belirlenmiş fonksiyon kazancı alellerinin doğal lokusa dahil edildiği C. parapsilosis'in laboratuvar suşlarının kullanıldığı bir çalışmada , flukonazole dirençli bir C. parapsilosis izolatından G583R amino asit ikamesi ile Mrr1p içeren suşlar , vahşi tip aleli barındıran suşlara kıyasla dirençli flukonazol ve vorikonazol MIC'ye yol açtı (Branco ve diğerleri, 2015 ). Benzer şekilde, tek SNP içeren MRR1 alellerine sahip suşlar, MRR1 gen ifadesinde ~5 kat ve MDR1 gen ifadesinde ~70 kat artışa sahipti .

            Başka bir çalışmada, C. parapsilosis'teki flukonazol direncinin mekanizmalarını aydınlatmak için C. parapsilosis'in flukonazole dirençli 35 ilgisiz ve ilişkisiz dört duyarlı izolatı incelenmiştir (Berkow ve diğerleri, 2015 ). On altı dirençli izolat , CDR1'i aşırı eksprese etti , diğer üç dirençli izolat, MDR1 aşırı ekspresyonu sergiledi ve sekiz dirençli izolat, duyarlı izolatlarla karşılaştırıldığında ERG11'in aşırı ekspresyonunu gösterdi. ERG11 , MDR1 ve aşırı ekspresyonuna yol açacak varsayılan fonksiyon kazancı mutasyonlarını tanımlamak için UPC2 , MRR1 ve TAC1 ortologlarını sıralarkenCDR1 , bir izolattan UPC2'de sadece bir heterozigoz mutasyon geri kazanıldı, bu da flukonazole dirençli C. parapsilosis'te ERG11 aşırı ekspresyonunun UPC2 tarafından aracılık edilmediğini düşündürür . Geri kazanılan TAC1 mutasyonları, CDR1 aşırı ekspresyonuna tam olarak karşılık gelmedi ve geri kazanılanlar, fonksiyon kazanımı CaTAC1 alellerinde bulunanlara benzer değildi. Benzer şekilde, geri kazanılan MRR1 mutasyonları, CaMRR1'in fonksiyon kazancı alellerinde bulunan herhangi bir mutasyona karşılık gelmedi . Daha sonra, CDR1, CDR1'in üçünden silindi.-flukonazol MİK'de yalnızca bir dilüsyon azalmasıyla sonuçlanan aşırı eksprese eden izolatlar. MDR1'i aşırı eksprese eden üç izolatta MDR1 silinmesi, iki izolatta flukonazol MİK'de bir dilüsyonda azalma ve üçüncüsünde flukonazol MİK'de değişiklik olmadığını gösterdi. C. parapsilosis'te azol direncinde ergosterol biyosentez yolundaki değişikliklerin rolünü ele almak için ERG11 ve ERG3 sekanslandı. İzolatların sterol profilleri tarafından desteklenen hiçbir ERG3 mutasyonu geri kazanılmadı. Tek bir ERG11mutasyonu (Y132F) bir dirençli izolatta geri kazanılmıştır ve ilave on izolatta Y132F ve R398I mutasyonlarının bir kombinasyonu bulunmuştur. Bu on bir izolattan dokuzunda, sterol profilinde Erg11 işlevselliğindeki bir değişikliğin göstergesi olan bir değişiklik oldu. Bu çalışma, azole dirençli C. parapsilosis izolatlarında dışa akış pompalarının diferansiyel ekspresyonunun yaygın olarak bulunmasına rağmen , dirençli fenotipin yalnızca aşırı ekspresyonlarından kaynaklanmadığını, bunun yerine çok faktörlü olduğunu ve ERG11 mutasyonunu ve/veya aşırı ekspresyonunu içerdiğini gösterir.

            Candida tropikalis
            Diğer Candida türleri ile karşılaştırıldığında , C. tropikalis'teki azol direncinin mekanizmaları hakkında nispeten az şey bilinmektedir . Çin'den 52 klinik C. tropikalis izolatının analizi, flukonazole dirençli izolatlar arasında ortalama ERG11 ekspresyon seviyesinin -duyarlı izolatlara göre 4 kattan daha yüksek olduğunu buldu (Jiang ve diğerleri, 2013 ). Ayrıca, ERG11 ekspresyonu, itrakonazol ve vorikonazole de dirençli flukonazole dirençli izolatların bir alt kümesi arasında daha da yüksekti. Bu sonuçlar yakın zamanda 35 C. tropicalis'i karakterize eden benzer bir çalışma tarafından tekrarlandı.dokuzu flukonazole duyarlı olmayan Kore üniversite hastanelerinden izolatlar (Choi ve diğerleri, 2016 ). Flukonazole yüksek oranda duyarlı grupta ERG11 ekspresyonunda önemli değişkenlik (~150 kat) gözlenirken, ERG11 ekspresyonu hem flukonazole daha az duyarlı (MIC 1–2 μg/ml) hem de flukonazole duyarlı olmayan (MIC ≥ 4 μg/ml) izolatlar arasında önemli ölçüde daha yüksekti. Bu çalışma aynı zamanda C. tropikalis UPC2 genini sıraladı ve birkaç heterozigot ve homozigot mutasyon buldu. Bununla birlikte, bu mutasyonların çoğu, ERG11'i aşırı eksprese ettiği bulunmayan flukonazole duyarlı izolatlarda gözlemlenmiştir ve bunların UPC2'nin düzenleyici işlevi üzerindeki etkilerinin daha fazla karakterizasyonu yapılmıştır.gereklidir.

            Azole dirençli klinik C. tropicalis izolatlarının moleküler karakterizasyonu, ergosterol biyosentetik yolundaki değişiklikleri de ortaya çıkarmıştır (Vandeputte ve diğerleri, 2005 ; Eddouzi ve diğerleri, 2013 ; Jiang ve diğerleri, 2013 ; Choi ve diğerleri, 2016 ). Tunus'tan bir klinik kan örneğinden geri kazanılan bir flukonazol dirençli C. tropikalis izolatının hem ERG3 hem de ERG11'de mutasyonlara sahip olduğu bulundu ve bunların S. cerevisiae'de heterolog olarak eksprese edildiğinde ergosterol biyosentezine ayrı ayrı zararlı olduğu gözlemlendi (Eddouzi ve diğerleri, 2013 ). Özellikle, ERG11bu izolattaki mutasyon, bir D275V amino asit ikamesi ve Erg11p'nin N-terminalinin yakınında 44 amino asit kaybıyla sonuçlanan 132 nükleotitin silinmesinden oluşuyordu. İlişkili klinik ERG3 mutasyonu olsun ya da olmasın, vahşi tip C. tropikalis ERG11'in kesik klinik varyantla homozigot değişimi, C. tropikalis'in flukonazole duyarlı bir referans suşunda yüksek düzeyde flukonazol direnci ile sonuçlandı . Ek olarak, amino asit ikamesi Y132F'ye bağlı olarak flukonazol duyarlılığının azalmasına neden olan bir ERG11 mutasyonu, C. albicans'ta iyi karakterize edilmiştir ve son zamanlarda flukonazole dirençli bir C. tropikalis'te gözlemlenmiştir.kandidemili bir hastadan izole edin (Tan ve diğerleri, 2015 ).

            Akış pompalarının aşırı ekspresyonunu C. tropikalis'te azol direnciyle ilişkilendiren ilk çalışmalardan biri , azaltılmış flukonazol duyarlılığına sahip genetik olarak ilişkili izolatlar üretmek için çeşitli konsantrasyonlarda flukonazol içeren ortam üzerinde bir referans C. tropikalis izolatının seri geçişini kullanmıştır (Barchiesi ve diğerleri, 2000 ). Pasajlamadan sonra, flukonazol duyarlılığı azalmış tüm izolatlar, hem C. tropikalis MDR1'in hem de C. albicans CDR1'e yüksek homolojiye sahip bir genin ekspresyonunda artış gösterdi.. Her iki durumda da artan ekspresyonun, flukonazol içermeyen ortam üzerinde daha fazla pasajdan elde edilen flukonazole duyarlı revertantlarda azaldığı bulundu. Klinik C. tropicalis izolatları arasında azol direncinde aşırı akış pompası ekspresyonunun rolü daha az net bir şekilde tanımlanmıştır. Çin'den yukarıda belirtilen 52 klinik C. tropikalis izolatında MDR1 ve CDR1 ekspresyonu incelendiğinde , flukonazole duyarlı ve dirençli izolatlar arasında anlamlı bir fark gözlenmedi (Jiang ve ark., 2013 ). Buna karşılık, Kore üniversite hastanelerinden 35 klinik izolat arasında hem MDR1 hem de CDR1 ifadesihem flukonazole daha az duyarlı hem de flukonazole duyarlı olmayan izolatlarda anlamlı olarak daha yüksek olduğu gözlendi. Bununla birlikte, flukonazole oldukça duyarlı kontrol grubunda gözlemlenen MDR1 ve CDR1 ekspresyonundaki büyük değişkenliğin sırasıyla ~50 kat ve ~30 kat olduğuna dikkat etmek önemlidir (Wang ve diğerleri, 2015 ). Bugüne kadar, bu akış pompalarının potansiyel rolünü doğrudan tasvir etmeye yönelik deneyler henüz C. tropikalis'te yapılmamıştır ve C. albicans MRR1 ve TAC1'in homologları incelenmemiştir.

            candida krusei
            C. krusei , kesin mekanizması tam olarak anlaşılamamış olsa da, flukonazole özünde dirençlidir. Çeşitli çalışmalar, C. krusei'nin doğuştan gelen azol direncini, yani ATP bağlayıcı kaset taşıyıcı Abc1p yoluyla dışarı akış pompası aktivitesine ve azaltılmış ilaç birikimine (Marichal ve diğerleri, 1995; Katiyar ve Edlind, 2001; Lamping ve diğerleri, 2009) Erg11p için azaltılmış azol afinitesi (Marichal ve diğerleri, 1995; Venk) ile ilişkilendirmiştir. ateswarlu ve diğerleri, 1997; Orozco ve diğerleri , 1998 ; Gine ve diğerleri , 2006 ; Lamping ve diğerleri , 2009). Hücre içi azol birikiminin pasif ve kolaylaştırılmış difüzyon mekanizmalarından biri veya muhtemelen her ikisi yoluyla meydana geldiğini gösteren kanıtlar bulunduğundan, hücre zarındaki zar akışkanlığını etkileyen değişiklikler azol direnciyle de ilişkilendirilebilir (Mansfield ve diğerleri, 2010; Kolaczkowska ve Kolaczkowski , 2016 ) . Ek olarak, bir C. krusei suşunda ERG11 içeren kromozomda bir trizomi keşfi, azol direnci ile ilgili etkileri henüz bilinmese de, bu türlerde anöploidinin nadir olmadığını düşündürmektedir (Lamping ve diğerleri, 2009 ).

            Diğer azollere karşı direnç mekanizmaları da net olarak tanımlanmamıştır. Örneğin, itrakonazole dirençli C. krusei izolatlarının analizi, ilacın hücre içi içeriğinin azaldığını ve ilaç hedefi için değişmemiş afinitenin muhtemelen itrakonazol direncini tetiklediğini ortaya çıkardı (Marichal ve diğerleri, 1995 ; Venkateswarlu ve diğerleri, 1996 ). Bununla birlikte, daha yakın zamanlarda, hem Erg11p'yi hem de akış pompası Abc2p'yi kodlayan genlerin aşırı ekspresyonunun da itrakonazol direncinde rol oynayabileceği öne sürülmüştür (Tavakoli ve diğerleri, 2010; He ve diğerleri, 2015 ). C. krusei'deki mantar öldürücü aktivitesine rağmen (Rubio ve diğerleri, 2005 )), vorikonazole direnç de ortaya çıkmıştır ve mevcut araştırma, akış pompası Abc2 ve Erg11'i kodlayan genlerin aşırı ekspresyonunun daha geçici direnç özellikleri kazandırdığı, buna karşın Abc1p'nin artan ekspresyonunun ve ERG11'deki nokta mutasyonlarının, vorikonazolün uzun süreli varlığında kararlı bir şekilde dirençli bir patojen elde etmek için zaman ilerledikçe baskın çıktığı bir teoriyi desteklemektedir (Ricardo ve diğerleri , 2014 ) . Azole dirençli C. krusei'de Erg11p amino asit sübstitüsyonları gözlemlenmiştir ve Y166S durumunda Erg11p işlevine müdahale ettiği tahmin edilmiştir (Ricardo ve diğerleri, 2014 ; Silva ve diğerleri, 2016 ). Daha yeni antifungal ajanlar posakonazol ve izavukonazol,C. krusei (Lee ve diğerleri, 2000 ; Rybak ve diğerleri, 2015 ), bu ajanlara karşı direnç raporları nispeten seyrektir (Espinel-Ingroff ve diğerleri, 2014 ; Pfaller ve diğerleri, 2015 ). Bununla birlikte, ABD'deki NAC suşlarını bölgelere göre inceleyen yakın tarihli bir analizde, Candida krusei'nin posakonazole direnci, izolatların %13-16,7'sinde ortaya çıkan posakonazol direnciyle, Amerika Birleşik Devletleri'nin doğusunda en yüksekti (Pfaller ve diğerleri, 2014b ). Bununla birlikte, C. krusei'de bu ajanlara karşı direnç mekanizmaları araştırılmayı beklemektedir.

            candida glabrata
            C. glabrata, S. cerevisiae ile daha yakından ilişkili haploid bir maya olduğu için burada tartışılan Candida türleri arasında benzersizdir . C. glabrata'nın klinik izolatlarında azol direncinin gelişimi, aşağı akış hedeflerinin farklı ekspresyonuna yol açan çinko küme transkripsiyon faktörü Pdrl'de (Vermitsky ve Edlind, 2004 ) aktive edici mutasyonların varlığıyla neredeyse tamamen bağlantılı olmuştur . Neredeyse tüm klinik izolatların , inhibitör alanda, aktive edici alanda, orta homoloji bölgesinde ve ksenobiyotik bağlanma bölgesinde bulunan bu tür mutasyonlarla PDR1 mutasyonlarına sahip olduğu bulunmuştur . PDR1'in hızlı edinimimutasyonlar, uyumsuzluk onarım geni MSH2'deki yüksek mutasyon insidansından kaynaklanıyor olabilir , bu da hiper değişken bir fenotiple sonuçlanır (Healey ve diğerleri, 2016 ). Aktive edici mutasyonlar, CDR1 ve PUP1'in artan ekspresyonu haricinde aşağı akış efektör genlerinin farklı ekspresyon modellerini sergiler ve mutasyonun yeri ile değiştirilmiş gen ekspresyonu arasında hiçbir korelasyon bulunmamıştır (Tsai ve diğerleri, 2006 , 2010 ; Ferrari ve diğerleri, 2009 ; Caudle ve diğerleri, 2011 ; Paul ve diğerleri, 2011 ). Pleiotropik ilaç yanıt elemanı (PDRE) doğrudan Pdr1 tarafından bağlanan genler arasında (Paul ve ark.,2014 ), sadece üçü, ABC taşıyıcıları CDR1 (Sanglard ve diğerleri, 1999 ), PDH1 ( CDR2 ) (Miyazaki ve diğerleri, 1998 ; Sanglard ve diğerleri, 2001 ) ve SNQ2 (Sanguinetti ve diğerleri, 2005 ; Torelli ve diğerleri, 2008 ), doğrudan azol direncine bağlanmıştır. Son çalışmalar, klotrimazole duyarlı klinik izolatlara kıyasla klotrimazole dirençli izolatlarda dört MFS taşıyıcısının ekspresyonunun arttığını göstermiştir. Bunlardan biri olan TPO3'ün bozulması, klotrimazol ve flukonazol duyarlılığını orta derecede artırmıştır (Costa ve ark., 2016). Bu bulgular, MFS taşıyıcılarının C. glabrata'daki azol direncinde küçük bir rolü olabileceğini düşündürmektedir .

            Şaşırtıcı bir şekilde, ERG11 , C. glabrata'da klinik azol direncinde önemli bir rol oynuyor gibi görünmemektedir (Sanglard ve diğerleri, 1999 ; Vermitsky ve Edlind, 2004 ; Sanguinetti ve diğerleri, 2005 ). C. glabrata'nın sadece iki klinik izolatında artan ERG11 ekspresyonu gözlemlenmiştir (vanden Bossche ve diğerleri, 1992 ; Redding ve diğerleri, 2003 ). Bir izolattaki yukarı regülasyonun daha sonra ERG11 içeren tüm kromozomun duplikasyonundan kaynaklandığı ve fenotipin azol içermeyen ortamda müteakip pasajla kaybolduğu bulundu (Marichal ve diğerleri, 1997) .). C. glabrata'nın tek bir dirençli klinik izolatının, hücre zarında ergosterolün tamamen yokluğuna yol açan, ERG11'deki yanlış bir mutasyona bağlı olarak işlevsel olmayan bir 14-a-sterol demetilaza sahip olduğu gösterilmiştir (Hull ve diğerleri, 2012 ). Azol hedefiyle ilgili direnç mekanizmalarına sahip ek klinik izolatlar tanımlanmamıştır.

            C. glabrata, azol tedavisinden kaçınmaya izin veren, değiştirilmiş hücre zarı sterolleri ile büyüme yeteneğine sahiptir. C. glabrata , vahşi tip suşlarda hem ergosterol biyosentez yolu bloke edildiğinde hem de normal koşullar altında (Tsai ve diğerleri, 2004 ; Bard ve diğerleri, 2005 ) ekzojen sterolleri alabilir (Nakayama ve diğerleri , 2000 ). Aus1p, eksojen sterollerin varlığında azollere karşı toleranstan sorumlu sterol taşıyıcı olarak tanımlanmıştır (Nakayama ve diğerleri, 2007 ). C. albicans'ın son zamanlarda aerobik koşullar altında sterolleri aldığı gösterilmiştir; ancak, C. glabratasterolleri alma kabiliyetinde daha liberaldir ve bunu hem aerobik hem de anaerobik koşullarda yapar ve serum ve flukonazol varlığında aerobik koşullar altında alımı arttırır (Zavrel ve diğerleri, 2013 ) .

            C. glabrata'daki azol direnci , aynı zamanda, mitokondriyal işlevini kaybetmiş ve solunum yetmezliğine neden olan hücreler olan minyon mutantların oluşumuna da atfedilmiştir (Defontaine ve diğerleri, 1999 ; Brun ve diğerleri, 2003 ). Küçük mutantlar, laboratuvarda azoller veya etidyum bromür ile işlenerek üretilebilir. Bu mutant fenotip klinik olarak geri kazanılmıştır (Bouchara ve diğerleri, 2000 ; Ferrari ve diğerleri, 2011 ), ancak klinik izolatlar arasında yaygın değildir. Minyon mutantlardaki azol direnci, ABC taşıyıcıları CDR1, CDR2 ve SNQ2'nin yukarı regülasyonu ile ilişkilendirilmiştir (Sanglard ve diğerleri, 2001 ; Ferrari ve diğerleri,2011 ), Pdr1'e bağımlıdır (Tsai ve diğerleri, 2006 ). Minyon mutantlar, orantısız miktarda ergosterol ve çok az ergosterol ara ürünü ile değiştirilmiş sterol profilleri sergiler; bununla birlikte, ERG11 sekansında veya ekspresyonunda herhangi bir değişiklik tespit edilmemiştir (Brun ve diğerleri, 2004 ).

            Git: Sonuçlar
            Candida türleri, insanlarda yüzeyel ve yayılmış mantar enfeksiyonlarının çoğundan sorumludur. Azol antifungalleri bu tür enfeksiyonlar için uzun süredir etkili tedavi sağlarken, son epidemiyolojik çalışmalar, bazı Candida türlerinde intrinsik azol direncinin yanı sıra yüksek düzeyde azol direnci gelişiminin klinik ortamda kritik öneme sahip bir sorun olduğunu göstermektedir. C. albicans'ta yüksek düzeyde azol direncinin moleküler mekanizmalarını aydınlatmak için kapsamlı çalışmalar yapılırkenergosterol biyosentezi gen mutasyonunun ve ERG geninin ve ilaç effluks pompası yukarı regülasyonunun azol direncinin ana aracıları olarak rolünü ortaya çıkarmıştır, bu tür bir dirence önemli ölçüde katkıda bulunan başka faktörlerin de açıkça rol oynadığı açıktır. Benzer şekilde, NAC, C. albicans ile yakından ilişkili olsa da , bu, azol direncinin benzer moleküler mekanizmalarına mutlaka dönüşmez.

            Bu derlemede vurgulanan NAC türlerinden C. parapsilosis, C. tropicalis, C. krusei ve C. glabrata'nın tümü, CaCDR1 ve CaMDR1'e ortolog olan ABC taşıyıcı ve/veya MFS genlerini ifade eder . Bununla birlikte, tartışıldığı gibi, azole dirençli NAC'de bu genlerin değiştirilmiş ekspresyonunun, farklı türlerde dirence farklı şekilde katkıda bulunduğu görülmektedir. Ayrıca, C. tropikalis, C. parapsilosis ve C. krusei'de azol akışını ve sterol biyosentezini yöneten transkripsiyonel düzenleyiciler ve genetik mutasyonlar tam olarak incelenmemiştir. Son olarak, ERG11'deki mutasyonlarda belirgin farklılıklar vardır.Bu türler arasında klinik izolatlarda azol direncini etkilediği bulunmuştur. Bu türlerde azol direnci ortaya çıkmaya devam ettikçe, bu önemli klinik sorunun üstesinden gelmek için bu türler tarafından kullanılan direnç mekanizmaları arasındaki önemli farklılıkların daha eksiksiz bir şekilde anlaşılması gerekecektir.

            Git: yazar katkısı
            SW , Candida glabrata ile ilgili bölümü yazdı , Giriş'e katkıda bulundu ve genel metni düzenledi. EB, _Candida parapsilosis_ ile ilgili bölümü yazdı ve Giriş'e katkıda bulundu. JR, Candida tropicalis ile ilgili bölümü yazdı , Giriş'e katkıda bulundu ve verileri Tablo'da derledi.​Tablo 1.1. AN _ Candida krusei _ ile ilgili bölümü yazdı , Giriş'e katkıda bulundu ve Şekil tasarladı​Şekil 1.1. KB, Candida albicans ile ilgili bölümü yazdı , Giriş'e katkıda bulundu ve genel metni düzenledi. PDR incelemeyi denetledi, özeti ve sonucu yazdı, Giriş'e katkıda bulundu ve genel metni düzenledi.

            Git: Finansman
            PDR laboratuvarından yapılan araştırmalar, Ulusal Sağlık Enstitülerinden (R01 AI058145) alınan bir hibe ile finanse edilmektedir.

            çıkar çatışması beyanı

            Yazarlar, araştırmanın potansiyel bir çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişki olmaksızın yürütüldüğünü beyan eder.

            Git: Referanslar
            • Abi-Said D., Anaissie E., Uzun O., Raad I., Pinzcowski H., Vartivarian S. (1997). Farklı Candida türlerinin neden olduğu hematojen kandidiyazis epidemiyolojisi . klinik bulaştırmak. Dis. 24 , 1122–1128. 10.1086/513663 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Alarco AM, Raymond M. (1999). bZip transkripsiyon faktörü Cap1p, Candida albicans'ta çoklu ilaç direnci ve oksidatif stres yanıtında yer alır . J. Bacteriol. 181 , 700–708. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Azie N., Neofytos D., Pfaller M., Meier-Kriesche HU, Quan SP, Horn D. (2012). PATH (Prospective Antifungal Therapy) Alliance(R) kaydı ve invaziv mantar enfeksiyonları: güncelleme 2012 . teşhis Mikrobiyoloji. bulaştırmak. Dis. 73 , 293–300. 10.1016/j.diagmicrobio.2012.06.012 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Barchiesi F., Calabrese D., Sanglard D., Falconi Di Francesco L., Caselli F., Giannini D., et al.. (2000). Candida tropikalis ATCC 750'de deneysel flukonazol direnci indüksiyonu . Antimikrob. Ajan Chemother. 44 , 1578–1584. 10.1128/AAC.44.6.1578-1584.2000 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Bard M., Sturm AM, Pierson CA, Brown S., Rogers KM, Nabinger S., et al.. (2005). Candida glabrata'da sterol alımı : sterol oksotrofik suşların kurtarılması . teşhis Mikrobiyoloji. bulaştırmak. Dis. 52 , 285–293. 10.1016/j.diagmicrobio.2005.03.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Bennett JE, Izumikawa K., Marr KA (2004). Profilaksi sırasında Candida glabrata'da artan flukonazol direncinin mekanizması . Antimikrob. Ajan Chemother. 48 , 1773–1777. 10.1128/AAC.48.5.1773-1777.2004 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Berberi A., Noujeim Z., Aoun G. (2015). İnsan immün yetmezlik virüsü/edinilmiş immün yetmezlik sendromu hastalarında orofaringeal kandidiyaz epidemiyolojisi ve CD4+ sayıları . J. Int. Oral. Sağlık 7 , 20–23. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Berkow EL, Manigaba K., Parker JE, Barker KS, Kelly SL, Rogers PD (2015). Çoklu ilaç taşıyıcıları ve sterol biyosentezindeki değişiklikler, Candida parapsilosis'te azol antifungal direncine katkıda bulunur . Antimikrob. Ajan Chemother. 59 , 5942–5950. 10.1128/AAC.01358-15 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Blot S., Janssens R., Claeys G., Hoste E., Buyle F., De Waele JJ, et al.. (2006). Flukonazol tüketiminin kandida ekolojisindeki uzun vadeli eğilimler üzerindeki etkisi . J. Antimikrob. kimyager. 58 , 474–477. 10.1093/jac/dkl241 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Bouchara JP, Zouhair R., Le Boudouil S., Renier G., Filmon R., Chabasse D., ve diğerleri. (2000). Candida glabrata'nın azole dirençli küçük bir mutantının in-vivo seçimi . J.Med. Mikrobiyoloji. 49 , 977–984. 10.1099/0022-1317-49-11-977 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Branco J., Silva AP, Silva RM, Silva-Dias A., Pina-Vaz C., Butler G., et al.. (2015). Candida parapsilosis'teki flukonazol ve vorikonazol direnci, MRR1 transkripsiyon faktörü genindeki fonksiyon kazanımı mutasyonları ile sağlanır . Antimikrob. Ajan Chemother. 59 , 6629–6633. 10.1128/AAC.00842-15 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Brun S., Aubry C., Lima O., Filmon R., Bergès T., Chabasse D., ve diğerleri.. (2003). Candida glabrata'da solunum ve azol antifungallere duyarlılık arasındaki ilişkiler . Antimikrob. Ajan Chemother. 47 , 847–853. 10.1128/AAC.47.3.847-853.2003 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Brun S., Berges T., Poupard P., Vauzelle-Moreau C., Renier G., Chabasse D., et al.. (2004). Candida glabrata'nın minyon mutantlarında azol direncinin mekanizmaları . Antimikrob. Ajan Chemother. 48 , 1788–1796. 10.1128/AAC.48.5.1788-1796.2004 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Castanheira M., Messer SA, Rhomberg PR, Dietrich RR, Jones RN, Pfaller MA (2014). 2012'de toplanan yaygın ve yaygın olmayan Candida türleri için isavukonazol ve dokuz karşılaştırıcı antifungal duyarlılık profili: yeni CLSI klinik sınır değerlerinin ve epidemiyolojik eşik değerlerinin uygulanması . Mycopathologia 178 , 1–9. 10.1007/s11046-014-9772-2 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Caudle KE, Barker KS, Wiederhold NP, Xu L., Homayouni R., Rogers PD (2011). Candida glabrata Pdr1 regulon'un genom çapında ifade profili analizi . ökaryot. Hücre 10 , 373–383. 10.1128/EC.00073-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Chapeland-Leclerc F., Hennequin C., Papon N., Noël T., Girard A., Socie G., ve diğerleri.. (2010). Bir hematopoietik kök hücre nakli alıcısından seri olarak elde edilen Candida glabrata kan dolaşımı izolatlarında flusitozin, azol ve kaspofungin direncinin kazanılması . Antimikrob. Ajan Chemother. 54 , 1360–1362. 10.1128/AAC.01138-09 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Chau AS, Gurnani M., Hawkinson R., Laverdiere M., Cacciapuoti A., McNicholas PM (2005). Sterol Δ5,6-desatürazın etkisizleştirilmesi, Candida albicans'ta virülansı azaltır . Antimikrob. Ajan Chemother. 49 , 3646–3651. 10.1128/AAC.49.9.3646-3651.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Chen KH, Chang CT, Yu CC, Huang JY, Yang CW, Hung CC (2006). Candida parapsilosis peritonitinin periton diyalizi hastalarında diğer Candida peritonitlerine göre daha fazla komplikasyonu vardır . Ren. Hata. 28 , 241–246. 10.1080/08860220600580431 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Cho EJ, Shin JH, Kim SH, Kim HK, Park JS, Sung H., ve diğerleri.. (2015). Uzun süreli fungemisi olan bir nötropeni hastasından alınan Candida glabrata izolatlarında azoller, ekinokandinler ve amfoterisin B'yi içeren çoklu direnç profillerinin ortaya çıkışı . J. Antimikrob. kimyager. 70 , 1268–1270. 10.1093/jac/dku518 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Choi MJ, Won EJ, Shin JH, Kim SH, Lee WG, Kim MN ve diğerleri.. (2016). Flukonazole duyarlı olmayan Candida tropicalis izolatlarının flukonazole duyarlı olmayan izolatlarla karşılaştırıldığında direnç mekanizmaları ve klinik özellikleri . Antimikrob. Ajan Chemother. 60 , 3653–3661. 10.1128/AAC.02652-15 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Cleveland AA, Harrison LH, Farley MM, Hollick R., Stein B., Chiller TM, ve diğerleri. (2015). İki ABD metropol bölgesinde azalan kandidemi insidansı ve değişen Candida direnci epidemiyolojisi , 2008-2013: nüfusa dayalı sürveyansın sonuçları . PLoS BİR 10 :e0120452. 10.1371/journal.pone.0120452 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Klinik Laboratuvar Standartları Enstitüsü (2012). Mayaların Broth Dilution Antifungal Duyarlılık Testi için Referans Yöntemi; Dördüncü Bilgi Eki, M27-S4 . Wayne, PA: CLSI. [ Google Akademik ]
            • Cornely OA, Gachot B., Akan H., Bassetti M., Uzun O., Kibbler C., et al.. (2015). Avrupa Kanser Araştırma ve Tedavi Örgütü'nün (EORTC 65031) Bulaşıcı Hastalıklar Grubu'nun (IDG) bir kanser kohortunda fungeminin epidemiyolojisi ve sonucu . klinik bulaştırmak. Dis. 61 , 324–331. 10.1093/cid/civ293 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Corsello S., Spinillo A., Osnengo G., Penna C., Guaschino S., Beltrame A., et al.. (2003). İtalya'da vulvovajinal kandidiyazın epidemiyolojik bir araştırması . Avro. J. Obstet. jinekol. Üreme Biol. 110 , 66–72. 10.1016/S0301-2115(03)00096-4 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Costa C., Ribeiro J., Miranda IM, Silva-Dias A., Cavalheiro M., Costa-de-Oliveira S., et al.. (2016). Candida glabrata klinik izolatlarında klotrimazol ilaç direnci, ilacın artan ekspresyonu ile ilişkilidir: H(+) antiporterleri CgAqr1, CgTpo1, CgTpo3 ve CgQdr2 . Ön. Mikrobiyoloji. 7 :526. 10.3389/fmicb.2016.00526 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Coste A., Selmecki A., Forche A., Diogo D., Bougnoux ME, d'Enfert C., et al.. (2007). Ardışık Candida albicans izolatlarında azol direnç mekanizmalarının genotipik evrimi . Ökaryotik Hücre 6 , 1889–1904. 10.1128/EC.00151-07 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Coste AT, Karababa M., Ischer F., Bille J., Sanglard D. (2004). CDR genlerinin transkripsiyonel aktivatörü olan TAC1 , Candida albicans ABC taşıyıcıları CDR1 ve CDR2'nin düzenlenmesinde yer alan yeni bir transkripsiyon faktörüdür . ökaryot. Hücre 3 , 1639–1652. 10.1128/EC.3.6.1639-1652.2004 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Coste A., Turner V., Ischer F., Morschhäuser J., Forche A., Selmecki A., et al.. (2006). CDR1 ve CDR2'yi düzenleyen bir transkripsiyon faktörü olan Tac1p'deki bir mutasyon , Candida albicans'ta antifungal dirence aracılık etmek için kromozom 5'te heterozigotluk kaybıyla birleştirilir . Genetik 172 , 2139–2156. 10.1534/genetics.105.054767 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Defontaine A., Bouchara JP, Declerk P., Planchenault C., Chabasse D., Hallet JN (1999). Candida glabrata'da mitokondriyal DNA eksikliği ile ilişkili azollere karşı in vitro direnç . J.Med. Mikrobiyoloji. 48 , 663–670. 10.1099/00222615-48-7-663 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Diekema D., Arbefeville S., Boyken L., Kroeger J., Pfaller M. (2012). Otuz yılda sağlık hizmetiyle ilişkili kandideminin değişen epidemiyolojisi . teşhis Mikrobiyoloji. bulaştırmak. Dis. 73 , 45–48. 10.1016/j.diagmicrobio.2012.02.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Dunkel N., Blass J., Rogers PD, Morschhäuser J. (2008b). Çoklu ilaca direnç düzenleyici MRR1'deki mutasyonlar ve ardından heterozigotluk kaybı, flukonazole dirençli Candida albicans suşlarında MDR1 aşırı ekspresyonunun ana nedenidir . Mol. Mikrobiyoloji. 69 , 827–840. 10.1111/j.1365-2958.2008.06309.x [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Dunkel N., Liu TT, Barker KS, Homayouni R., Morschhäuser J., Rogers PD (2008a). Transkripsiyon faktörü Upc2p'deki bir işlev kazanımı mutasyonu, klinik bir Candida albicans izolatında ergosterol biyosentez genlerinin düzenlenmesine ve flukonazol direncinin artmasına neden olur . ökaryot. Hücre 7 , 1180–1190. 10.1128/EC.00103-08 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Eddouzi J., Parker JE, Vale-Silva LA, Coste A., Ischer F., Kelly S., et al.. (2013). Tunus hastanelerinden izole edilen klinik Candida türlerinde ilaç direncinin moleküler mekanizmaları . Antimikrob. Ajan Chemother. 57 , 3182–3193. 10.1128/AAC.00555-13 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Enwuru CA, Ogunledun A., Idika N., Enwuru NV, Ogbonna F., Aniedobe M., et al.. (2008). Lagos, Nijerya'daki ARV kliniklerine başvuran HIV ile enfekte hastalardan flukonazole dirençli fırsatçı orofaringeal Candida ve Candida olmayan maya benzeri izolatlar . Afr. Sağlık Bilimi 8 , 142–148. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Espinel-Ingroff A., Pfaller MA, Bustamante B., Canton E., Fothergill A., Fuller J., et al.. (2014). Sekiz Candida türünde flukonazol, posakonazol ve vorikonazol direncinin tespiti için epidemiyolojik eşik değerlerinin çok laboratuvarlı çalışması . Antimikrob. Ajan Chemother. 58 , 2006–2012. 10.1128/AAC.02615-13 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ferrari S., Ischer F., Calabrese D., Posteraro B., Sanguinetti M., Fadda G., et al.. (2009). Candida glabrata'nın CgPDR1'indeki fonksiyon mutasyonlarının kazanılması, yalnızca antifungal dirence aracılık etmekle kalmaz, aynı zamanda virülansı da arttırır . PLoS Hastalığı. 5 :e1000268. 10.1371/journal.ppat.1000268 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ferrari S., Sanguinetti M., De Bernardis F., Torelli R., Posteraro B., Vandeputte P., et al.. (2011). Candida glabrata'da azol direnci ile ilişkili mitokondriyal fonksiyonların kaybı, farelerde artan virülans ile sonuçlanır . Antimikrob. Ajan Chemother. 55 , 1852–1860. 10.1128/AAC.01271-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Fidel PL, Jr., Vazquez JA, Sobel JD (1999). Candida glabrata : C. albicans ile karşılaştırmalı olarak epidemiyoloji, patogenez ve klinik hastalığın gözden geçirilmesi . klinik Mikrobiyoloji. 12 , 80–96 . [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Flowers SA, Barker KS, Berkow EL, Toner G., Chadwick SG, Gygax SE ve diğerleri.. (2012). UPC2'deki işlev kazanımı mutasyonları, Candida albicans'ın azole dirençli klinik izolatlarında ERG11 yukarı regülasyonunun sık görülen bir nedenidir . ökaryot. Hücre 11 , 1289–1299. 10.1128/EC.00215-12 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Flowers SA, Colón B., Whaley SG, Schuler MA, Rogers PD (2015). ERG11'de klinik olarak türetilmiş mutasyonların Candida albicans'ta azol direncine katkısı . Antimikrob. Ajan Chemother. 59 , 450–460. 10.1128/AAC.03470-14 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Fothergill AW, Sutton DA, McCarthy DI, Wiederhold NP (2014). Yeni antifungal sınır değerlerinin Candida türlerinde antifungal direnç üzerindeki etkisi . J. Clin. Mikrobiyoloji. 52 , 994–997. 10.1128/JCM.03044-13 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Garzoni C., Nobre VA, Garbino J. (2007). Candida parapsilosis endokarditi: literatürün karşılaştırmalı bir incelemesi . Avro. J. Clin. Mikrobiyoloji. bulaştırmak. Dis. 26 , 915–926. 10.1007/s10096-007-0386-1 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Gong X., Luan T., Wu X., Li G., Qiu H., Kang Y., ve diğerleri.. (2016). Çin'deki yoğun bakım ünitelerinde invaziv kandidiyazis: Candida albicans ve non- albicans Candida enfeksiyonlarının risk faktörleri ve prognozları . Am. J. Bulaş. Kontrol 44 , e59–e63. 10.1016/j.ajic.2015.11.028 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Goswami D., Goswami R., Banerjee U., Dadhwal V., Miglani S., Lattif AA ve diğerleri.. (2006). Diabetes mellitus ve vulvovajinal kandidiyazisli hastalardan izole edilen Candida türlerinin paterni ve bunların tek doz oral flukonazol tedavisine yanıtları . J. Bulaş. 52 , 111–117. 10.1016/j.jinf.2005.03.005 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Grossman NT, Pham CD'si, Cleveland AA, Lockhart SR (2015). Bir ABD sürveyans sisteminden izole edilen Candida parapsilosis'teki flukonazol direncinin moleküler mekanizmaları . Antimikrob Ajanlar Chemother. 59 , 1030–1037. 10.1128/AAC.04613-14 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Gine J., Sánchez-Somolinos M., Cuevas O., Peláez T., Bouza E. (2006). Candida krusei'de flukonazol direnç mekanizmaları : akış pompalarının katkısı . Med. Mikol. 44 , 575–578. 10.1080/13693780600561544 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Hachem R., Hanna H., Kontoyiannis D., Jiang Y., Raad I. (2008). İnvaziv kandidiyazisin değişen epidemiyolojisi: Hematolojik malignitede kandideminin önde gelen nedenleri olarak Candida glabrata ve Candida krusei . Kanser 112 , 2493–2499. 10.1002/cncr.23466 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • He X., Zhao M., Chen J., Wu R., Zhang J., Cui R., ve diğerleri.. (2015). Hem ERG11 hem de ABC2 genlerinin aşırı ekspresyonu , Candida krusei'nin klinik izolatlarında itrakonazol direncinden sorumlu olabilir . PLoS BİR 10 :e0136185. 10.1371/journal.pone.0136185 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Healey KR, Zhao Y., Perez WB, Lockhart SR, Sobel JD, Farmakiotis D., ve diğerleri. (2016). Mantar patojeni Candida glabrata'da tanımlanan yaygın mutatör genotip , çoklu ilaç direncini arttırır . Nat. komün. 7 :11128. 10.1038/ncomms11128 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Heilmann CJ, Schneider S., Barker KS, Rogers PD, Morschhäuser J. (2010). Upc2p transkripsiyon faktöründeki bir A643T mutasyonu, Candida albicans'ta yapısal ERG11 yukarı regülasyonu ve artan flukonazol direncine neden olur . Antimikrob. Ajan Chemother. 54 , 353–359. 10.1128/AAC.01102-09 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Holland J., Young ML, Lee O., CA Chen S. (2003). Candida albicans dışındaki mayaların vulvovajinal taşıyıcılığı . Seks. İletim bulaştırmak. 79 , 249–250. 10.1136/sti.79.3.249 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Hoot SJ, Smith AR, Kahverengi RP, Beyaz TC (2011). Upc2p'deki bir A643V amino asit ikamesi, Candida albicans'ın iyi karakterize edilmiş klinik izolatlarında azol direncine katkıda bulunur . Antimikrob Ajanlar Chemother. 55 , 940–942. 10.1128/AAC.00995-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Umut W., Morton A., Eisen DP (2002). Nozokomiyal Candida albicans dışı kandidemi prevalansındaki artış ve Candida krusei ile flukonazol kullanımı arasındaki ilişki . J. Hosp. bulaştırmak. 50 , 56–65. 10.1053/jhin.2001.1131 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Hull CM, Parker JE, Bader O., Weig M., Gross U., Warrilow AG, et al.. (2012). ERG11'de bir yanlış anlamlı mutasyon barındıran ve azollere ve amfoterisin B'ye çapraz direnç sergileyen Candida glabrata'nın ergosterol eksikliği olan bir klinik izolatında fakültatif sterol alımı . Antimikrob. Ajan Chemother. 56 , 4223–4232. 10.1128/AAC.06253-11 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Imhof A., Balajee SA, Fredricks DN, Englund JA, Marr KA (2004). Vorikonazol alan kök hücre nakli alıcılarında çığır açan mantar enfeksiyonları . klinik bulaştırmak. Dis. 39 , 743–746. 10.1086/423274 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Jiang C., Dong D., Yu B., Cai G., Wang X., Ji Y., ve diğerleri.. (2013). Çin'de Candida tropikalis'in 52 klinik izolatında azol direncinin mekanizmaları . J. Antimikrob. kimyager. 68 , 778–785. 10.1093/jac/dks481 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Katiyar SK, Edlind TD (2001). Candida krusei'de çoklu ilaç direnciyle ilişkili ABC taşıyıcı genlerinin tanımlanması ve ifadesi . Med. Mikol. 39 , 109–116. 10.1080/mmy.39.1.109.116 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kauffman CA (2005). kandidüri _ klinik bulaştırmak. Dis. 41 ( Ek 6 ), S371–S376. 10.1086/430918 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Kelly SL, Kuzu DC, Kelly DE (1997). Sterol 22-desatüraz, sitokrom P45061, ksenobiyotik metabolizmasında aktiviteye sahiptir . FEBS Letonya 412 , 233–235. 10.1016/S0014-5793(97)00785-0 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Klingspor L., Tortorano AM, Peman J., Willinger B., Hamal P., Sendid B., et al.. (2015). Yoğun bakım ünitelerindeki cerrahi hastalarda İnvaziv Candida enfeksiyonları: Avrupa Tıbbi Mikoloji Konfederasyonu (ECMM) (2006-2008) tarafından başlatılan prospektif, çok merkezli bir araştırma . klinik Mikrobiyoloji. bulaştırmak. 21 , 87.e1–87.e10 10.1016/j.cmi.2014.08.011 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Kolaczkowska A., Kolaczkowski M. (2016). Albicans dışı Candida türlerinde ilaç direnç mekanizmaları ve bunların düzenlenmesi . J. Antimikrob. kimyager. 71 , 1438–1450. 10.1093/jac/dkv445 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Kothari A., Sagar V. (2009). Hindistan'daki üçüncü basamak bir bakım enstitüsünde candida kan dolaşımı enfeksiyonlarının epidemiyolojisi . Ind. J. Med. Mikrobiyoloji. 27 , 171–172. 10.4103/0255-0857.49440 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Krcmery V., Jr., Mrazova M., Kunova A., Gray E., Mardiak J., Jurga L., et al.. (1999). Kanser hastalarında Candida albicans dışındaki türlere bağlı nozokomiyal kandidemiler . Tek bir kanser kurumunda 10 yıl içinde 45 epizodun etiyolojisi, risk faktörleri ve sonucu . Destek. Care Cancer 7 , 428–431. 10.1007/s005200050304 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lamping E., Ranchod A., Nakamura K., Tyndall JD, Niimi K., Holmes AR, et al.. (2009). Abc1p, Candida krusei'de doğuştan gelen azol direnci lehine dengeyi bozan bir çoklu ilaç akış taşıyıcısıdır . Antimikrob. Ajan Chemother. 53 , 354–369. 10.1128/AAC.01095-08 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lee I., Fishman NO, Zaoutis TE, Morales KH, Weiner MG, Synnestvedt M., et al.. (2009). Flukonazole dirençli Candida glabrata kan dolaşımı enfeksiyonları için risk faktörleri . Ark. Stajyer. Med. 169 , 379–383. 10.1001/archinte.169.4.379 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lee JK, Peters D., Obias AA, Noskin GA, Peterson LR (2000). 1984'ten beri izole edilen Candida albicans ve Candida krusei'ye karşı vorikonazolün etkinliği . Int. J. Antimikrob. Ajanlar 16 , 205–209. 10.1016/S0924-8579(00)00191-6 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Lin MY, Carmeli Y., Zumsteg J., Flores EL, Tolentino J., Sreeramoju P., et al.. (2005). Önceki antimikrobiyal tedavi ve hastanede edinilmiş Candida glabrata ve Candida krusei fungemi riski: vaka-vaka-kontrol çalışması . Antimikrob. Ajan Chemother. 49 , 4555–4560. 10.1128/AAC.49.11.4555-4560.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Liu TT, Znaidi S., Barker KS, Xu L., Homayouni R., Saidane S., et al.. (2007). Candida albicans Tac1p regulon'un genom çapında ifadesi ve konum analizleri . ökaryot. Hücre 6 , 2122–2138. 10.1128/EC.00327-07 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lortholary O., Desnos-Ollivier M., Sitbon K., Fontanet A., Bretagne S., Dromer F. (2011). Yakın zamanda kaspofungin veya flukonazol maruziyeti, kandidemi epidemiyolojisini etkiler: 2.441 hastayı içeren prospektif çok merkezli bir çalışma . Antimikrob. Ajan Chemother. 55 , 532–538. 10.1128/AAC.01128-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Lortholary O., Renaudat C., Sitbon K., Madec Y., Denoeud-Ndam L., Wolff M., et al.. (2014). Yoğun bakım ünitelerinde kandidemi insidansı ve mortalitesindeki endişe verici eğilimler (Paris bölgesi, 2002-2010) . Yoğun Bakım Med. 40 , 1303–1312. 10.1007/s00134-014-3408-3 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • MacPherson S., Akache B., Weber S., De Deken X., Raymond M., Turcotte B. (2005). Candida albicans çinko küme proteini Upc2p, antifungal ilaçlara direnç sağlar ve ergosterol biyosentetik genlerinin bir aktivatörüdür . Antimikrob. Ajan Chemother. 49 , 1745–1752. 10.1128/AAC.49.5.1745-1752.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Mahmoudi Rad M., Zafarghandi A., Amel Zabihi M., Tavallaee M., Mirdamadi Y. (2012). Vulvovajinal kandidiyazis ile ilişkili Candida türlerinin multipleks PCR ile tanımlanması . bulaştırmak. Dis. Obstet. jinekol. 2012 :872169. 10.1155/2012/872169 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Mansfield BE, Oltean HN, Oliver BG, Hoot SJ, Leyde SE, Hedstrom L., et al.. (2010). Azol ilaçları, Candida albicans ve diğer patojenik mantarlarda kolaylaştırılmış difüzyonla ithal edilmektedir . PLoS Hastalığı. 6 :e1001126. 10.1371/journal.ppat.1001126 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Manzano-Gayosso P., Hernández-Hernández F., Mendez-Tovar LJ, González- Monroy J., López-Martínez R. (2003). Sürekli ayaktan periton diyalizi (SAPD) alan 15 hastada fungal peritonit . Mikozlar 46 , 425–429. 10.1046/j.0933-7407.2003.00922.x [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Marichal P., Gorrens J., Coene MC, Le Jeune L., Vanden Bossche H. (1995). Candida krusei'nin azol antifungal ajanlara duyarlılığındaki farklılıkların kaynağı . Mikozlar 38 , 111–117. 10.1111/j.1439-0507.1995.tb00032.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Marichal P., Koymans L., Willemsens S., Bellens D., Verhasselt P., et al.. (1999). Sitokrom P450 14alfa-demetilazdaki (Erg11p, Cyp51p) mutasyonların Candida albicans'ta azol direncine katkısı . Mikrobiyoloji 145 ( Pt 10 ), 2701–2713. 10.1099/00221287-145-10-2701 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Marichal P., Vanden Bossche H., Odds FC, Nobels G., Warnock DW, Timmerman V., et al.. (1997). Azole dirençli bir Candida glabrata izolatının moleküler biyolojik karakterizasyonu . Antimikrob. Ajan Chemother. 41 , 2229–2237. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Martel CM, Parker JE, Bader O., Weig M., Gross U., Warrilow AG, et al.. (2010). Candida albicans'ın azole dirençli dört erg3 mutantının tanımlanması ve karakterizasyonu . Antimikrob. Ajan Chemother. 54 , 4527–4533. 10.1128/AAC.00348-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Martí-Carrizosa M., Sánchez-Reus F., March F., Coll P. (2014). Bir İspanyol hastanesinde mantar hastalığı: Candida parapsilosis'in 15 yıllık bir süre içindeki rolü . Tara. J. Bulaş. Dis. 46 , 454–461. 10.3109/00365548.2014.900190 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Merz WG, Karp JE, Schron D., Saral R. (1986). Candida krusei'nin neden olduğu fungemi insidansında artış . J. Clin. Mikrobiyoloji. 24 , 581–584. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Milazzo L., Peri AM, Mazzali C., Grande R., Cazzani C., Ricaboni D., et al.. (2014). Milano'daki (kuzey İtalya) bir üniversite hastanesinde gözlenen kandidemi ve 2010'dan 2014'e kadar yayınlanmış çalışmaların gözden geçirilmesi . Mycopathologia 178 , 227–241. 10.1007/s11046-014-9786-9 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Miyazaki H., Miyazaki Y., Geber A., ​​Parkinson T., Hitchcock C., Falconer DJ, et al.. (1998). Candida glabrata'da ilaç akışı ve bir ilaç taşıyıcı gen olan PDH1'in artan transkripsiyonu ile ilişkili flukonazol direnci . Antimikrob. Ajan Chemother. 42 , 1695–1701. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Miyazaki Y., Geber A., ​​Miyazaki H., Falconer D., Parkinson T., Hitchcock C., et al.. (1999). Candida albicans'ta ERG3'ün (C-5 sterol desatüraz geni) klonlanması, dizilenmesi, ekspresyonu ve alelik dizi çeşitliliği . Gen 236 , 43–51. 10.1016/S0378-1119(99)00263-2 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Morii D., Seki M., Binongo JN, Ban R., Kobayashi A., Sata M., et al.. (2014). Japonya, Osaka'daki hastanelerde kan kültürlerinden izole edilen Candida türlerinin dağılımı . J. Bulaş. kimyager. 20 , 558–562. 10.1016/j.jiac.2014.05.009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Morio F., Pagniez F., Lacroix C., Miegeville M., Le Pape P. (2012). Candida albicans sterol Δ5,6-desatürazdaki (Erg3p) amino asit sübstitüsyonları azol direnci sağlar: virülansı bozulmuş iki yeni mutantın karakterizasyonu . J. Antimikrob. kimyager. 67 , 2131–2138. 10.1093/jac/dks186 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Morschhäuser J., Barker KS, Liu TT, BlaB-Warmuth J., Homayouni R., Rogers PD (2007). Transkripsiyon faktörü Mrr1p, MDR1 akış pompasının ifadesini kontrol eder ve Candida albicans'ta çoklu ilaç direncine aracılık eder . PLoS Hastalığı. 3 :e164. 10.1371/journal.ppat.0030164 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Nakayama H., Izuta M., Nakayama N., Arisawa M., Aoki Y. (2000). Skualen sentaz ( ERG9 ) geninin tükenmesi farelerde Candida glabrata büyümesini bozmaz . Antimikrob. Ajan Chemother. 44 , 2411–2418. 10.1128/AAC.44.9.2411-2418.2000 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Nakayama H., Tanabe K., Bard M., Hodgson W., Wu S., Takemori D., et al.. (2007). Candida glabrata varsayılan sterol taşıyıcı geni CgAUS1, serum varlığında hücreleri azollere karşı korur . J. Antimikrob. kimyager. 60 , 1264–1272. 10.1093/jac/dkm321 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Nolte FS, Parkinson T., Falconer DJ, Dix S., Williams J., Gilmore C., et al.. (1997). Lösemili iki hastanın kanından flukonazol ve amfoterisin B'ye dirençli Candida albicans'ın izolasyonu ve karakterizasyonu . Antimikrob. Ajan Chemother. 41 , 196–199. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Nucci M., Colombo AL (2007). Candida tropikalis'e bağlı kandidemi : üçüncü basamak hastanelerde meydana gelen 188 bölümün klinik, epidemiyolojik ve mikrobiyolojik özellikleri . teşhis Mikrobiyoloji. bulaştırmak. Dis. 58 , 77–82. 10.1016/j.diagmicrobio.2006.11.009 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Orozco AS, Higginbotham LM, Hitchcock CA, Parkinson T., Falconer D., İbrahim AS, et al.. (1998). Candida krusei'de flukonazol direncinin mekanizması . Antimikrob. Ajan Chemother. 42 , 2645–2649. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Oxman DA, Chow JK, Frendl G., Hadley S., Hershkovitz S., Ireland P., et al.. (2010). Azalmış in vitro flukonazol duyarlılığı ile ilişkili kandidemi : Candida türü duyarlılık paternini öngörüyor mu? J. Antimikrob. kimyager. 65 , 1460–1465. 10.1093/jac/dkq136 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pappas PG, Kauffman CA, Andes DR, Clancy CJ, Marr KA, Ostrosky-Zeichner L., ve diğerleri. (2016). Kandidiyazis yönetimi için klinik uygulama kılavuzu: Amerika Bulaşıcı Hastalıklar Derneği tarafından 2016 güncellemesi . klinik bulaştırmak. Dis. 62 , e1–e50. 10.1093/cid/civ1194 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Paul S., Bair TB, Moye-Rowley WS (2014). Yabani tip ve rho0 hücrelerinde Candida glabrata Pdr1 transkripsiyon faktörü için genomik bağlanma bölgelerinin tanımlanması . Antimikrob. Ajan Chemother. 58 , 6904–6912. 10.1128/AAC.03921-14 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Paul S., Schmidt JA, Moye-Rowley WS (2011). Candida glabrata patojeninden CgPdr1 transkripsiyon faktörünün düzenlenmesi . ökaryot. Hücre 10 , 187–197. 10.1128/EC.00277-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Andes DR, Diekema DJ, Horn DL, Reboli AC, Rotstein C., et al.. (2014a). 2.496 hastada albicans dışı Candida türlerine bağlı invaziv kandidozun epidemiyolojisi ve sonuçları : Prospektif Antifungal Tedavi (PATH) kaydından 2004-2008 verileri . PLoS BİR 9 :e101510. 10.1371/journal.pone.0101510 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Castanheira M., Lockhart SR, Ahlquist AM, Messer SA, Jones RN (2012a). Candida glabrata'nın flukonazole dirençli kan dolaşımı izolatları arasında ekinokandinlere karşı azalmış duyarlılık ve direnç sıklığı . J. Clin. Mikrobiyoloji. 50 , 1199–1203. 10.1128/JCM.06112-11 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Diekema DJ (2012b). Candida türlerinin antifungal duyarlılık testindeki ilerleme . Clinical and Laboratory Standards Institute brot mikrodilüsyon yöntemleri kullanılarak, 2010 ila 2012 . J. Clin. Mikrobiyoloji. 50 , 2846–2856. 10.1128/JCM.00937-12 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Diekema DJ, Gibbs DL, Newell VA, Ellis D., Tullio V., et al.. (2010). ARTEMİS DİSK Küresel Antifungal Gözetim Çalışmasının sonuçları, 1997 - 2007: Candida Türlerinin flukonazol ve vorikonazole duyarlılıklarının CLSI standardize disk difüzyonu ile belirlenen 10,5 yıllık analizi . J. Clin. Mikrobiyoloji. 48 , 1366–1377. 10.1128/JCM.02117-09 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Diekema DJ, Gibbs DL, Newell VA, Nagy E., Dobiasova S., et al.. (2008). Çok ilaca dirençli fırsatçı bir mantar patojeni olan Candida krusei : ARTEMİS DİSK Antifungal Sürveyans Programından, 2001'den 2005'e coğrafi ve zamansal eğilimler . J. Clin. Mikrobiyoloji. 46 , 515–521. 10.1128/JCM.01915-07 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Jones RN, Castanheira M. (2014b). Amerika Birleşik Devletleri tıbbi tesislerinde 2006-2011 yılları arasında 6 yıllık bir dönemde toplanan Candida non- albicans suşlarının bölgesel veri analizi . Mikozlar 57 , 602–611. 10.1111/myc.12206 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Messer SA, Woosley LN, Jones RN, Castanheira M. (2013). 2010'dan 2011'e kadar toplanan klinik Fırsatçı maya ve küf izolatları için ekinokandin ve triazol antifungal duyarlılık profilleri: antifungal direncin coğrafi ve zamansal eğilimlerinin karakterizasyonu için yeni CLSI klinik sınır değerlerinin ve epidemiyolojik eşik değerlerinin uygulanması . J. Clin. Mikrobiyoloji. 51 , 2571–2581. 10.1128/JCM.00308-13 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pfaller MA, Rhomberg PR, Messer SA, Jones RN, Castanheira M. (2015). 2013'te toplanan yaygın ve yaygın olmayan fırsatçı mantarlar için isavukonazol, mikafungin ve 8 karşılaştırmalı antifungal ajanın duyarlılık profilleri: CLSI türe özgü klinik kesme noktaları ve önerilen epidemiyolojik kesme değerleri kullanılarak antifungal ilaç direncinin geçici analizi . teşhis Mikrobiyoloji. bulaştırmak. Dis. 82 , 303–313. 10.1016/j.diagmicrobio.2015.04.008 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ray D., Goswami R., Banerjee U., Dadhwal V., Goswami D., Mandal P., ve diğerleri.. (2007). Diyabet ve vulvovajinal kandidiyazisli hastalarda oral flukonazol ile karşılaştırıldığında Candida glabrata prevalansı ve borik asit vajinal fitillere yanıtı . Diyabet Bakımı 30 , 312–317. 10.2337/dc06-1469 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Redding SW, Kirkpatrick WR, Saville S., Coco BJ, White W., Fothergill A., et al.. (2003). Baş ve boyun radyasyonu alan orofaringeal kandidiyazisli bir hastadan Candida glabrata izolatlarında flukonazole çoklu direnç paternleri . J. Clin. Mikrobiyoloji. 41 , 619–622. 10.1128/JCM.41.2.619-622.2003 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Ricardo E., Miranda IM, Faria-Ramos I., Silva RM, Rodrigues AG, Pina-Vaz C. (2014). Candida krusei tarafından vorikonazole direncin in vivo ve in vitro kazanılması . Antimikrob. Ajan Chemother. 58 , 4604–4611. 10.1128/AAC.02603-14 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Richter SS, Galask RP, Messer SA, Hollis RJ, Diekema DJ, Pfaller MA (2005). Vulvovajinite neden olan Candida türlerinin antifungal duyarlılıkları ve tekrarlayan vakaların epidemiyolojisi . J. Clin. Mikrobiyoloji. 43 , 2155–2162. 10.1128/JCM.43.5.2155-2162.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Rubio MC, de Ocáriz IR, Gil J., Benito R., Rezusta A. (2005). Vorikonazolün Candida türlerine karşı potansiyel fungisidal etkisi . Int. J. Antimikrob. Ajanlar 25 , 264–267. 10.1016/j.ijantimicag.2004.11.007 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Rybak JM, Marx KR, Nishimoto AT, Rogers PD (2015). İzavukonazol: yeni bir triazol antifungal ajan ile farmakoloji, farmakodinamik ve güncel klinik deneyim . Farmakoterapi 35 , 1037–1051. 10.1002/phar.1652 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Sanglard D., Ischer F., Bille J. (2001). Candida glabrata'da azol antifungallerine karşı yüksek frekanslı direnç kazanımında ATP bağlayıcı kaset taşıyıcı genlerin rolü . Antimikrob. Ajan Chemother. 45 , 1174–1183. 10.1128/AAC.45.4.1174-1183.2001 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Sanglard D., Ischer F., Calabrese D., Majcherczyk PA, Bille J. (1999). Candida glabrata kaynaklı ATP bağlayıcı kaset taşıyıcı geni CgCDR1, klinik izolatların azol antifungal ajanlara direncinde rol oynar . Antimikrob. Ajan Chemother. 43 , 2753–2765. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Sanguinetti M., Posteraro B., Fiori B., Ranno S., Torelli R., Fadda G. (2005). Bir hastane antifungal direnci araştırması sırasında toplanan Candida glabrata'nın klinik izolatlarında azol direncinin mekanizmaları . Antimikrob. Ajan Chemother. 49 , 668–679. 10.1128/AAC.49.2.668-679.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Selmecki A., Forche A., Berman J. (2006). İlaca dirençli Candida albicans'ta anöploidi ve izokromozom oluşumu . Bilim 313 , 367–370. 10.1126/science.1128242 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Selmecki A., Gerami-Nejad M., Paulson C., Forsche A., Berman J. (2008). Bir izokromozom, iki genin, ERG11 ve TAC1'in amplifikasyonu yoluyla in vivo ilaç direnci sağlar . Mol. Mikrobiyoloji. 68 , 624–641. 10.1111/j.1365-2958.2008.06176.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Sharifzadeh A., Khosravi AR, Shokri H., Asadi Jamnani F., Hajiabdolbaghi ​​M., Ashrafi Tamami I. (2013). Oral mikroflora ve orofaringeal kandidiyazisli HIV + hastalarında risk faktörleriyle ilişkisi . J. Mycol. Med. 23 , 105–112. 10.1016/j.mycmed.2013.02.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Silva AP, Miranda IM, Guida A., Synnott J., Rocha R., Silva R., et al.. (2011). Azole dirençli Candida parapsilosis suşlarının transkripsiyonel profili . Antimikrob. Ajan Chemother. 55 , 3546–3556. 10.1128/AAC.01127-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Silva DB, Rodrigues LM, Almeida AA, Oliveira KM, Grisolia AB (2016). Azole dirençli Candida türlerinin klinik izolatlarında ERG11 genindeki yeni nokta mutasyonları . Mem. Enst. Oswaldo Cruz 111 , 192–199. 10.1590/0074-02760150400 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Sobel JD (2010). Candida kan dolaşımı enfeksiyonlarının epidemiyolojisindeki değişen eğilimler : Endişe edilecek bir konu mu? kritik Bakım Med. 38 , 990–992. 10.1097/CCM.0b013e3181d16866 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Sobel JD, Kauffman CA, McKinsey D., Zervos M., Vazquez JA, Karchmer AW, et al.. (2000). Kandidüri: flukonazol ve plasebo ile tedavinin randomize, çift kör bir çalışması. Ulusal Alerji ve Bulaşıcı Hastalıklar Enstitüsü (NIAID) Mikozlar Çalışma Grubu . klinik bulaştırmak. Dis. 30 , 19–24. 10.1086/313580 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Souza AC, Fuchs BB, Pinhati HM, Sigueira RA, Hagen F., Meis JF, et al.. (2015). Flukonazole Candida parapsilosis direnci: enfekte Galleria melonella larvalarında moleküler mekanizmalar ve in vivo etki . Antimikrob. Ajan Chemother. 59 , 6581–6587. 10.1128/AAC.01177-15 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Tan J., Zhang J., Chen W., Sun Y., Wan Z., Li R., ve diğerleri.. (2015). ERG11 genindeki A395T mutasyonu, Candida tropicalis'te kandidemiye neden olan flukonazol direnci sağlar . Mycopathologia 179 , 213–218. 10.1007/s11046-014-9831-8 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Tang HJ, Liu WL, Lin HL, Lai CC (2014). Kanser hastalarında kandidemi epidemiyolojisi ve prognostik faktörleri . PLoS BİR 9 :e99103. 10.1371/journal.pone.0099103 [ PMC ücretsiz makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Tang JL, Kung HC, Lei WC, Yao M., Wu UI, Hsu SC ve diğerleri.. (2015). Sistemik antifungal profilaksi olmadan indüksiyon kemoterapisi alan akut miyeloid lösemi hastalarında yüksek invaziv mantar enfeksiyonu insidansı: Tayvan'da prospektif bir gözlemsel çalışma . PLoS BİR 10 :e0128410. 10.1371/journal.pone.0128410 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Tavakoli M., Zaini F., Kordbacheh M., Safara M., Raoofian R., Heidari M. (2010). Candida krusei'de ERG11 geninin azoller tarafından düzenlenmesi . Daru 18 , 276–280. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Torelli R., Posteraro B., Ferrari S., La Sorda M., Fadda G., Sanglard D., ve diğerleri.. (2008). ATP bağlayıcı kaset taşıyıcı kodlayan gen CgSNQ2, Candida glabrata'nın CgPDR1'e bağlı azol direncine katkıda bulunur . Mol. Mikrobiyoloji. 68 , 186–201. 10.1111/j.1365-2958.2008.06143.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Tsai HF, Bard M., Izumikawa K., Krol AA, Sturm AM, Culbertson NT, et al.. (2004). Candida glabrata erg1 mutantı, azollere karşı artan hassasiyet ve düşük oksijen gerilimi . Antimikrob. Ajan Chemother. 48 , 2483–2489. 10.1128/AAC.48.7.2483-2489.2004 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Tsai HF, Krol AA, Sarti KE, Bennett JE (2006). Bir pleiotropik ilaç direnç ağının transkripsiyonel düzenleyicisi olan Candida glabrata PDR1 , klinik izolatlarda ve minyon mutantlarda azol direncine aracılık eder . Antimikrob. Ajan Chemother. 50 , 1384–1392. 10.1128/AAC.50.4.1384-1392.2006 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Tsai HF, Sammons LR, Zhang X., Suffis SD, Su Q., Myers TG, ve diğerleri.. (2010). Candida glabrata orofarengeal izolatlarında azol direnç mekanizmasının mikroarray ve moleküler analizleri . Antimikrob. Ajan Chemother. 54 , 3308–3317. 10.1128/AAC.00535-10 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • vanden Bossche H., Marichal P., Odds FC, Le Jeune L., Coene MC (1992). Azole dirençli bir Candida glabrata izolatının karakterizasyonu . Antimikrob. Ajan Chemother. 36 , 2602–2610. 10.1128/AAC.36.12.2602 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vandeputte P., Larcher G., Bergès T., Renier G., Chabasse D., Bouchara JP (2005). Candida tropikalis'in klinik bir izolatında azol direncinin mekanizmaları . Antimikrob. Ajan Chemother. 49 , 4608–4615. 10.1128/AAC.49.11.4608-4615.2005 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Venkateswarlu K., Denning DW, Kelly SL (1997). Candida krusei'nin sitokrom P450'sinin azol antifungal ilaçlarla inhibisyonu ve etkileşimi . J.Med. Veteriner. Mikol. 35 , 19–25. 10.1080/02681219780000821 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Venkateswarlu K., Denning DW, Manning NJ, Kelly SL (1996). Candida krusei'de azaltılmış ilaç birikimi, itrakonazol direncinden sorumludur . Antimikrob. Ajan Chemother. 40 , 2443–2446. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
            • Vermitsky JP, Edlind TD (2004). Candida glabrata'da azol direnci : çoklu ilaç taşıyıcılarının yukarı regülasyonunu koordine edin ve Pdr1 benzeri bir transkripsiyon faktörü için kanıt . Antimikrob. Ajan Chemother. 48 , 3773–3781. 10.1128/AAC.48.10.3773-3781.2004 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Vermitsky JP, Self MJ, Chadwick SG, Trama JP, Adelson ME, Mordechai E., et al.. (2008). Türe özgü PCR tespiti kullanılarak farklı yaş gruplarındaki kadınlardan izole edilen Candida türlerinin vajinal flora araştırması . J. Clin. Mikrobiyoloji. 46 , 1501–1503. 10.1128/JCM.02485-07 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Wang E., Farmakiotis D., Yang D., McCue DA, Kantarjian HM, Kontoyiannis DP, et al.. (2015). Akut lösemili hastalarda sürekli gelişen kandidemi manzarası: kaspofungine duyarsızlık ve çoklu ilaç direnci, artan mortalite ile ilişkilidir . J. Antimikrob. kimyager. 70 , 2362–2368. 10.1093/jac/dkv087 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Weems JJ, Jr. (1992). Candida parapsilosis : epidemiyoloji, patojenite, klinik belirtiler ve antimikrobiyal duyarlılık . klinik bulaştırmak. Dis. 14 , 756–766. 10.1093/clinids/14.3.756 [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Weinberger M., Leibovici L., Perez S., Samra Z., Ostfeld I., Levi I., et al.. (2005). Candida albicans ile kandidemi özellikleri, non- albicans Candida türleri ve mortalite tahmin edicileri ile karşılaştırıldığında . J. Hosp. bulaştırmak. 61 , 146–154. 10.1016/j.jhin.2005.02.009 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Wingard JR, Merz WG, Rinaldi MG, Johnson TR, Karp JE, Saral R. (1991). Flukonazol ile profilaktik olarak tedavi edilen kemik iliği transplantasyonu ve nötropenisi olan hastalarda Candida krusei enfeksiyonunda artış . N.İngilizce J.Med. 325 , 1274–1277. 10.1056/NEJM199110313251803 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Xiang MJ, Liu JY, Ni PH, Wang S., Shi C., Wei B., et al.. (2013). Candida albicans'ın klinik izolatlarında azol direnci ile ilişkili Erg11 mutasyonları . FEMS Maya Çöz. 13 , 386–393. 10.1111/1567-1364.12042 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Yang YL, Ho YA, Cheng HH, Ho M., Lo HJ (2004). Candida türlerinin amfoterisin B ve flukonazole duyarlılıkları : Candida tropicalis'te flukonazol direncinin ortaya çıkışı . bulaştırmak. Kontrol Hosp. Salgın. 25 , 60–64. 10.1086/502294 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Yang YL, Wang AH, Wang CW, Cheng WT, Li SY, Lo HJ ve diğerleri.. (2008). Tayvan'daki Candida türlerinin amfoterisin B ve flukonazole duyarlılıkları Mayaların Antimikrobiyal Direncinin Gözetimi 2006 . teşhis Mikrobiyoloji. bulaştırmak. Dis. 61 , 175–180. 10.1016/j.diagmicrobio.2008.01.011 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Ying Y., Zhang J., Huang SB, Liu FD, Liu JH, Zhang J., ve diğerleri.. (2015). Üçüncü basamak bir hastanede 2005'ten 2009'a kadar Candida türlerinin 3.056 klinik izolatının flukonazol duyarlılığı . Hintli J. Med. Mikrobiyoloji. 33 , 413–415. 10.4103/0255-0857.158569 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Yoo JI, Choi CW, Lee KM, Kim YK, Kim TU, Kim EC ve diğerleri.. (2009). Güney Kore hastanelerinde Candida türlerinin antifungal duyarlılığının ulusal sürveyansı . Med. Mikol. 47 , 554–558. 10.1080/13693780802354037 [ PubMed ] [ CrossRef ] [ Google Akademik ]
            • Zavrel M., Hoot SJ, Beyaz TC (2013). Üç mantar türünde, Candida albicans, Candida glabrata ve Saccharomyces cerevisiae'de aerobik ve anaerobik koşullar altında sterol ithalatının karşılaştırılması . ökaryot. Hücre 12 , 725–738. 10.1128/EC.00345-12 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Zhang L., Xiao M., Watts MR, Wang H., Fan X., Kong F., ve diğerleri.. (2015). Uzun süreli antifungal tedavi alan inatçı bir kandidemi hastasından elde edilen bir dizi Candida parapsilosis izolatında flukonazol direncinin gelişimi . BMC Enfeksiyonu. Dis. 15 :340. 10.1186/s12879-015-1086-6 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

            Yorum yap


            • #7
              PATH (Prospective Antifungal Therapy) Alliance® kaydı ve istilacı mantar enfeksiyonları: 2012 güncellemesi

              Nkechi Azie 1, Dionissios Neofitos , Michael Pfaller , Herwig-Ulf Meier-Kriesche , Shun Ping Quan , David Boynuz
              üyelikler yıkılmak üyelik

              Soyut

              Prospective Antifungal Therapy Alliance (PATH Alliance®), 2004 ve 2008 yılları arasında Kuzey Amerika'daki 25 tıp merkezinde hastaneye kaldırılan hastalarda invaziv mantar enfeksiyonlarına (IFI'ler) yönelik prospektif sürveyans gerçekleştirdi ve IFI'lerin epidemiyolojisi, teşhisi, tedavisi ve ölüm oranları hakkında bilgi topladı. Toplamda 6845 hastada 7526 IFI tanımlandı. Candida spp. (%73,4) en sık görülen patojenlerdi, bunu Aspergillus spp. (%13,3) ve diğer mayalar (%6,2). Kültür, IFI kategorilerinin çoğunda en sık kullanılan tanı testiydi. İnvaziv kandidozlu hastaların çoğu flukonazol (%48,3) ve ekinokandinler (%34,0) ile tedavi edilirken, invaziv aspergilloz için ana antifungal ajan vorikonazol (%45,5) idi. 12 haftalık hayatta kalma oranı 37 arasında değişiyordu. Hematopoietik kök hücre nakli alıcıları için %5'e, HIV/AIDS'li kişiler için ~%75.0'a. Özetle, PATH Alliance® kayıt defterinin bulguları, çok çeşitli ve çok sayıda IFI'nın epidemiyolojisinin daha iyi anlaşılmasını sağlar.

              Telif Hakkı © 2012 Elsevier Inc. Tüm hakları saklıdır.

              Yorum yap


              • #8
                Susamın ( Sesamum indicum L.) ve biyoaktif bileşiklerin (sesamin ve sesamolin) inflamasyon ve ateroskleroz üzerindeki etkileri: Bir derleme
                Elham Hadipour, seyed ahmad emami, Niloufar Tayarani-Najaran, Zahra Tayarani-Najaran
                https://doi.org/10.1002/fsn3.3407 BÖLÜMLER
                Soyut
                Enflamasyon, oksidatif stres, obezite, enfeksiyon, hiperlipidemi, hipertansiyon ve diyabet, uzun vadede arterlerin sertleşmesine yol açan aterosklerozun ana nedenleridir. Bu çalışmada, susamın mekanizmasına ve onun aktif bileşenleri olan sesamin ve sesamolin'in aterosklerozu düzenlediğine dair son bulguları gözden geçirdik. Susam, lipid peroksidasyonunu azaltabilir ve vücuttaki oksidatif durum dengesini kontrol eden enzimleri etkileyebilir. Enflamatuar sitokinleri modüle etmenin yanı sıra susam, prostaglandin E2 (PGE2), aktifleştirilmiş B hücrelerinin nükleer faktör kappa hafif zincir arttırıcısı (NF-kB) ve peroksizom proliferatörü ile aktive olan reseptör gama (PPAR-γ) gibi iltihaplanma sürecindeki sinyal yollarının ana aracılarını düzenler. Susam, farklı patojenlerin büyümesini azaltır. Obeziteye karşı savaşır ve kilo, vücut kitle indeksi (VKİ), bel çevresi, serum ve karaciğerin lipid sayısını azaltmaya yardımcı olur. Açlık kan şekerini (FBS) düşürmenin yanı sıra hemoglobin A1c (HbA1c) ve glikoz seviyelerini düşürür ve insülin fonksiyonunu iyileştirir. Yüksek linoleik asit, α-linolenik asit ve toplam çoklu doymamış yağ asidi (PUFA) içeriği ile susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. vücut kitle indeksi (VKİ), bel çevresi ve serum ve karaciğerin lipid sayısı. Açlık kan şekerini (FBS) düşürmenin yanı sıra hemoglobin A1c (HbA1c) ve glikoz seviyelerini düşürür ve insülin fonksiyonunu iyileştirir. Yüksek linoleik asit, α-linolenik asit ve toplam çoklu doymamış yağ asidi (PUFA) içeriği ile susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. vücut kitle indeksi (VKİ), bel çevresi ve serum ve karaciğerin lipid sayısı. Açlık kan şekerini (FBS) düşürmenin yanı sıra hemoglobin A1c (HbA1c) ve glikoz seviyelerini düşürür ve insülin fonksiyonunu iyileştirir. Yüksek linoleik asit, α-linolenik asit ve toplam çoklu doymamış yağ asidi (PUFA) içeriği ile susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. Açlık kan şekerini (FBS) düşürmenin yanı sıra hemoglobin A1c (HbA1c) ve glikoz seviyelerini düşürür ve insülin fonksiyonunu iyileştirir. Yüksek linoleik asit, α-linolenik asit ve toplam çoklu doymamış yağ asidi (PUFA) içeriği ile susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. Açlık kan şekerini (FBS) düşürmenin yanı sıra hemoglobin A1c (HbA1c) ve glikoz seviyelerini düşürür ve insülin fonksiyonunu iyileştirir. Yüksek linoleik asit, α-linolenik asit ve toplam çoklu doymamış yağ asidi (PUFA) içeriği ile susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. ve toplam çoklu doymamış yağ asidi (PUFA), susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. ve toplam çoklu doymamış yağ asidi (PUFA), susam, kan plazma lipidlerini etkili bir şekilde kontrol eder ve lipid profilini değiştirir. Hipertansiyon durumunda, çoklu mekanizmalar yoluyla endotel sağlığını korur ve arterlerin vazodilatasyona tepkisini korur. Susamdaki PUFA, kanın pıhtılaşmasını ve fibrinojen aktivitesini baskılar. Bahsedilen tüm özellikler, ateroskleroz ve kan damarlarının sertleşmesiyle mücadele eder ve bu incelemede susam için ayrıntılı olarak açıklanmıştır. 1. GİRİŞ


                Minimum yan etki ile toksin içermeyen gıda tüketimine yönelik eğilim nedeniyle doğal diyet ve şifalı otların kullanımı son yıllarda çok popüler hale geldi (Kelly ve ark., 2005 ) . Susam tohumları, diğer tohumlar arasında en yüksek yağ içeriğine sahiptir ve eşsiz tat ve aroması nedeniyle çeşitli gıdaların ortak bir bileşenidir. Susam uzun süredir Asya ülkelerinin gıda endüstrisinde yenilebilir yağ, kek hamuru, un ve fındıklı atıştırmalıklar gibi çeşitli formlarda popüler bir yenilebilir tahıl olarak kullanılmaktadır (Fukuda ve diğerleri, 1986a, 1986b; Gebremeskel ve diğerleri, 2022; Hashempour-Baltork ve diğerleri, 2018 ; Namiki ve Kobayashi , 1989 ; Shah , 2016 ) . Sesamum cinsiçiçekli bitkilerden biridir ve Pedaliaceae familyasına aittir. Bu cins, çoğu tropikal Afrika'ya özgü olan yaklaşık 20 türden oluşur. Susam eski Çin uygarlığında enerji elde etmek, zihni sakinleştirmek ve yaşlanmayı önlemek için kullanılmıştır (Weiss, 1983 ). Susam, hipertansiyon, hiperkolesterolemi, kanser ve yaşlanma gibi bir dizi hastalığın önlenmesine yardımcı olur (Kanu ve ark., 2010 ). Ayrıca trigliserit (TG) ve araşidonik asit (AA) seviyelerini düşürdüğü ve ayrıca antiinflamatuar ve östrojenik aktivitelere sahip olduğu gösterilmiştir (Hemalatha, 2007 ; Shahidi ve diğerleri, 1997) .). Basit fenoller ve flavonoller dahil olmak üzere sayısız fenolik bileşiğin kalbi koruduğu bilinmektedir. Susam tohumları, protein ve lipid ile birlikte, insan sağlığı için değerli bileşikler olarak bildirilen sesamin ve sesamolin gibi fenolik bileşiklere sahip lignanlar içerir (Dalibalta ve diğerleri, 2020; Fasuan ve diğerleri, 2018; Jayaraj ve diğerleri, 2020 ; Saleem ve diğerleri , 2021 ) .

                Ateroskleroz, atardamarların duvarlarının kalınlaşıp sertleşmesi ve elastikiyetini kaybetmesi sonucu oluşur ve aterom adı verilen lezyon içeriye doğru çıkıntı yaparak damar kanalının ve altındaki ortamın tıkanmasına neden olur. Aterosklerotik lezyonlar, lipid dolu köpük hücrelerin kalsifikasyonu ile başlar ve daha sonra lipid birikimi, aterom, fibroatromlara ilerler ve sonunda komplike lezyonlara yol açar. Aterom lezyonlarına ilerlemesinde önemli ve etkili faktörler enfeksiyon, obezite, hipertansiyon, hiperlipidemi, diabetes mellitus, inflamatuar süreç ve oksidatif strestir (Khan & Jackson, 2018; Rahman , 2001 ). Susamın tohumları ve yağı oksidatif koşullara dayanıklıdır (Fukuda ve diğerleri, 1986a , 1986b) .). Çeşitli çalışmalar, susamın oksidatif stresi, lipid peroksidasyonunu, kan basıncını, kan lipidlerini ve kan kolesterolünü düşürdüğünü ve ayrıca antiproliferatif aktiviteye sahip olduğunu göstermiştir (Ashakumary ve diğerleri, 1999; Lee ve diğerleri, 2005; Nakano ve diğerleri, 2007; Suja ve diğerleri, 2004; Visavadiya ve Narasimhacharya , 2008 ; Yokota ve diğerleri , 2007 ) . Bu inceleme, susamın ve ünlü lignanlarının (sesamin ve sesamolin) inflamasyon ve ateroskleroza karşı etkisini özetlemektedir. PubMed ve Scopus'ta susam veya sesamin veya ateroskleroz veya iltihaplı sesamolin içeren anahtar kelimeler içeren ilgili makaleler Eylül 2022'ye kadar gözden geçirilmiştir. 2 SUSAM FİTOKİMYASI


                Susam hem besleyici hem de biyoaktif içeriklere sahip en önemli sağlıklı besinlerden biridir. Susam yüksek miktarda protein, yağ asitleri, vitaminler, mineraller, karbonhidratlar, fitosteroller ve lignanlar içermektedir (Esmaeilzadeh Kenari & Razavi, 2022 ; Prakash & Naik, 2014 ). Susamın beslenme profili


                Susam tohumları %50-52 oranında yağ asidi gliseritlerinden (doymuş yağ olarak palmitik ve stearik ve doymamış olarak oleik, linoleik ve linolenik), %17-19 protein (arginin 140 mg, lösin 75 mg, metiyonin 36 mg, lizin 31 mg ve sistein 25 mg), karbonhidratlar %16-%18 karbonhidratlardan (3. %2 glikoz, %2,6 fruktoz ve %0,2 sükroz). Ayrıca yaklaşık %10,8 oranında lif, mineraller, vitaminler ve fitosteroller içerir (Kheirati Rounizi ve diğerleri, 2021 ; Prakash & Naik, 2014 ). Tablo 1 susamın beslenme profilini göstermektedir (Tablo 1 ). TABLO 1. Susam tohumunun beslenme profili (100 g başına).
                Protein 17 gr
                Karbonhidrat 25,7 gram
                Lif 14 gr
                doymuş yağ 6.7 gr
                tekli doymamış yağ 18.1 gram
                Doymamış yağ 21 gr
                Tiamin 0.8 miligram
                riboflavin 0.3 miligram
                Niasin 4.6 miligram
                B6 vitamini 0.8 miligram
                E vitamini 57.375 mikrogram
                Folat 98 miligram
                karoten 60 mikrogram
                Kalsiyum 989 miligram
                Ütü 14.8 miligram
                Magnezyum 356 miligram
                Fosfor 638 miligram
                Potasyum 475 miligram
                Çinko 7.2 miligram
                Bakır 2.5 mg
                Manganez 2.5 mg
                Selenyum 5.8 mikrogram
                fitosteroller 400–413 miligram
                Susamın biyoaktif bileşenleri

                2.2.1 Susam lignanları


                Liganlar, bitkilerde bulunan bir grup düşük moleküler ağırlıklı polifenollerdir ve fitoöstrojen ailesinde bulunan başlıca bileşikler arasındadır. Liganlar, fenilalaninden türetilen ve oksitleyici özelliklere sahip nispeten basit polifenolik malzemelerdir. Ana iskeletleri 2,3-benzilbütandır ve b-b birleşiminden C6C3'ün iki yapısal birimi oluşur. Oksitleyici enzimler ve dirigent protein bu dönüşümü kontrol eder (Umezawa, 2003 ; Willför ve diğerleri, 2006 ).

                Susam tohumları hem suda çözünür glikozitler, lignanlar hem de yağda çözünen lignanlar içerir. Sesamin ve sesamolin yağda çözünen lignanlardır ve sesaminol triglucoside, sesaminol diglucoside ve sesaminol monoglucoside suda çözünür (Bedigian & Harlan, 1986 ; Budowski & Markley, 1951 ; Hemalatha, 2004 ). Sesamin ve sesamolin arasındaki yapısal fark, furofuran ve piperonil grupları arasındaki oksijenin yer değiştirmesinden kaynaklanmaktadır (Jeng & Hou, 2005 ). Susam tohumlarındaki sesamin ve sesamolin miktarı sırasıyla 200–500 mg/100 g ve 200–300 mg/100 g'dır (Kamal-Eldin & Appelqvist, 1994 ).). Ayrıca kavrulmuş susam tohumlarından elde edilen susam yağlarındaki sesamin ve sesamolin seviyeleri sırasıyla 5–500 mg/kg ve 5–500 mg/kg'dır (Liu ve ark., 2019 ) . Lignanlar, güçlü antioksidanlar ve böcek öldürücüler şeklinde susam bitkisinin zararlılara karşı korunmasında önemli bir rol oynamaktadır (Jeng & Hou, 2005 ). Sesamin ve sesamolin, iki grup OH içeren sesamol ile karşılaştırıldığında, dört grup OH'ye sahip olmaları nedeniyle daha yüksek antioksidan etkilere sahiptir (Jeng & Hou, 2005 ). Sesamin, kavrulmuş susam tohumlarında en bol bulunan lignandır ve kavrulmuş susam tohumlarından elde edilen susam yağları, antiinflamatuar ve antialerjik etkiler de dahil olmak üzere yararlı etkilere sahiptir (Kamal-Eldin & Appelqvist, 1994; Liu ve diğerleri, 2019 ).). Ayrıca sinir hücrelerini oksidatif stresten koruduğu da gösterilmiştir. Ayrıca kimyasalların detoksifikasyonuna yol açar ve karaciğer hücresinde kimyasalların neden olduğu kanserli tümörlerin görülme sıklığını azaltır (Majdalawieh ve ark., 2021 ). Ayrıca sesamin ve sesamolin'in antihipertansif etkileri olduğu (Nakano ve ark., 2007 ), lipit peroksidasyon sistemindeki E vitamininin antioksidan aktivitesini arttırdığı (Hemalatha & Rao, 2004 ), kolesterolü düşürdüğü (Visavadiya & Narasimhacharya, 2008 ), karaciğerdeki yağ asitlerinin oksitleyici enzimlerini yükselttiği (Ashakumary ve ark., 1999 ) ve hipotansiyona karşı nöronları koruduğu gösterilmiştir. xia ve beyin hasarı (Cheng ve diğerleri, 2006 ; Lee ve diğerleri, 2005). 2.2.2 Susamda lignanların biyosentezi


                Sesaminin biyosentez yolunda, amino asit fenilalaninden E-Koniferil alkol üretilir. Daha sonra susam tohumlarında pinoresinol üretimine yol açar. Pinoresinol olgun tohumlarda CYP81Q1 geni tarafından piperitol ve sesamin'e dönüştürülür. Daha genç tohumlarda pinoresinol, sesamoline dönüştürülür (Jiao ve diğerleri, 1998 ; Ono ve diğerleri, 2006 ). 3 SUSAMIN FARMAKOKİNETİKLERİ


                Susam tohumu lignanlarının absorpsiyonu, dağılımı, metabolizması ve salgılanmasının karmaşık yönlerini açıklığa kavuşturmak için birçok çalışma yapılmıştır. Yutulduğunda, bazı lignanlar ince bağırsaktan emilir. Karaciğerde lignanlar oksidatif biyotransformasyona ve demetilasyona uğrarlar ve sonunda hidroksillenmiş katekol metabolitleri yaparlar. Görünüşe göre susam lignanının ana katekolik metaboliti, ağır (IR,2S,5R,6S)-6-(13,4-dihidroksifenil)-2-(3,4-metil lendioksifenil 1)-3,7-dioksabi-klo be 3,7-[3,3, O]oktan adlı bir bileşiktir. Bu bileşik, özellikle karaciğeri korumada susamın bazı biyolojik etkilerinden sorumlu olabilir. Bazıları, kalın bağırsağın proksimal kısmındaki veya üst kısmındaki bağırsak mikroflorası tarafından memeli lignanına, enterolaktona (ENL) ve daha az ölçüde enterodiole (END) dönüştürülür. ENL ve END, hayvan lignanları olmalarına ve sadece memelilerde bulunmalarına rağmen, bitki lignanları yoluyla metil ve hidroksil gruplarının enzimatik olarak uzaklaştırılmasıyla oluşurlar. ENL ve END hepatik-intestinal döngü yoluyla emilir. Ayrıca, katekol metabolitlerinin safraya salgılanması ve daha sonra kalın bağırsağın bağırsak florası tarafından ENL ve END'e metabolize edilmesi mümkündür. Katekol metabolitleri sonunda glukuronidleri oluşturur ve sülfatlar idrarla salgılanır. Ek olarak, susam lignanlarının metabolizmasının bir kısmının karaciğere ulaşmadan önce ince bağırsağın enterositlerinde meydana geldiğine dair kanıtlar vardır (Scott ve ark., ENL ve END hepatik-intestinal döngü yoluyla emilir. Ayrıca, katekol metabolitlerinin safraya salgılanması ve daha sonra kalın bağırsağın bağırsak florası tarafından ENL ve END'e metabolize edilmesi mümkündür. Katekol metabolitleri sonunda glukuronidleri oluşturur ve sülfatlar idrarla salgılanır. Ek olarak, susam lignanlarının metabolizmasının bir kısmının karaciğere ulaşmadan önce ince bağırsağın enterositlerinde meydana geldiğine dair kanıtlar vardır (Scott ve ark., ENL ve END hepatik-intestinal döngü yoluyla emilir. Ayrıca, katekol metabolitlerinin safraya salgılanması ve daha sonra kalın bağırsağın bağırsak florası tarafından ENL ve END'e metabolize edilmesi mümkündür. Katekol metabolitleri sonunda glukuronidleri oluşturur ve sülfatlar idrarla salgılanır. Ek olarak, susam lignanlarının metabolizmasının bir kısmının karaciğere ulaşmadan önce ince bağırsağın enterositlerinde meydana geldiğine dair kanıtlar vardır (Scott ve ark., 1999 ). 4 ATEROSKLEROZ


                Ateroskleroz, aortadan koroner arterlere kadar tüm damar sisteminin intima tabakasında lipidlerin ve inflamatuar hücrelerin birikmesi sonucu ortaya çıkan ve özelliği intimal plaklar olan kronik inflamatuar bir hastalıktır. Bu plağın oluşumu intima ve altındaki düz kasta küçük kolesterol kristallerinin birikmesiyle başlar. Daha sonra plaklar büyüyerek fibröz dokuyu geliştirir ve düz kası çevreler, bu da kan akışında azalmaya neden olur (Rafieian-Kopaei ve ark., 2014) .). Fibroblastlar tarafından bağ dokusu üretimi ve lezyonda kalsiyum birikmesi, arterlerin sertleşmesine veya sertleşmesine yol açar ve sonunda kan akışının ani bir şekilde tıkanmasına neden olur. Lipit ve kan şekerindeki artış, antioksidan durumu ve lipoprotein seviyelerini etkileyen oksidatif hasardaki artışla ilişkilidir (Rafieian-Kopaei ve diğerleri, 2014 ). Ayrıca obezite, yüksek tansiyon, inflamasyon ve enfeksiyöz ajanlar da aterosklerozun diğer nedenleridir. Çalışmalar, lipit düşürücü etkiye sahip bitki ve fitokimyasalların aterosklerozu ve endotel hasarını önleyebileceğini göstermiştir (Deng ve diğerleri, 2021 ; Hou ve diğerleri, 2020 ; Loy & Rivlin, 2000 ; Rahman, 2001 ). Susam ve oksidatif stres


                Çeşitli kanıtlar, serbest radikallerin aşırı üretimi veya antioksidan sistemin yetersizliği nedeniyle artan oksidatif stresin aterosklerozu geliştirebileceğini düşündürmektedir. Aktif oksijen türlerinin yüksek konsantrasyonları, membran peroksidasyonuna, protein değişikliğine, DNA yetmezliğine, nötrofillerin aktivasyonuna, sinyal iletim yollarının bozulmasına ve vasküler duvar hücreleri ile kalp hücrelerinin düzenlenmesine neden olabilir (Kattoor ve diğerleri, 2017 ) . Düşük yoğunluklu lipoprotein (LDL) kolesterol, doğal olarak aterojenik değildir, ancak oksitleyici LDL formuna dönüştürüldüğünde aterojen özelliğinin doğasına sahiptir (Linton ve diğerleri, 2019) .). Damar duvarında oksidatif strese neden olan ve yukarıdaki fenomeni uyaran en önemli kaynaklar şunlardır: nikotin amid adenin dinükleotid fosfat (NADPH), nitrik oksit sentaz (NOS), miyeloperoksidaz (MPO), ksantin oksidaz, lipoksijenaz ve siklooksijenaz (COX; Rabêlo ve ark., 2010) aktivasyonu . Ek olarak, antioksidan enzimler olan glutatyon peroksidaz (GPx), süperoksit dismutaz (SOD) ve katalaz (CAT) seviyelerinde artış görülür; ayrıca aterosklerotik hastalarda E, A, C vitaminlerinde azalma ve antioksidan kapasitede azalma gözlenmektedir (Lubrano ve Balzan, 2015) .). MPO, monositleri ve nötrofilleri uyaran oksitleyici enzimlerden biridir ve kan damarlarının duvarlarında iltihaplanmaya, aterosklerotik plakların oluşmasına ve sonuç olarak organlara kan akışının kesilmesine neden olur. Hastalığın diğer bir semptomu, damar genişletici olarak nitrik oksit (NO) üretiminin ve damar endoteline zarar veren arterlerin yüzeyindeki hidroksil radikalleri dahil olmak üzere reaktif oksijen türlerinin (ROS) üretimindeki bozulmadır (Cai & Harrison, 2000; Faruqi, 2013; Ndrepepa ve ark., 2005; Sukhovershin ve ark . , 2015 ) .). Antioksidanların kullanımı, oksidatif strese karşı koymada bir şekilde etkili olabilir. Birçok çalışma, antioksidanlar ve fenolik bileşikler açısından zengin bitki kaynaklarının tüketilmesiyle antioksidan sistemin güçlendirilmesinin oksidatif stresi azaltmada etkili olabileceğini göstermiştir (Lobo ve diğerleri, 2010; Tablo 2 ) . TABLO 2. Susamın ( Sesamum indicum L.) potansiyel terapötik etkileri
                Yağ (yemeklik yağ) antioksidan İnsan 35 gr Kan basıncında azalma, peroksidasyon, enzimatik (CAT, SOD, GPx) ve enzimatik olmayan antioksidanların (C vitamini) aktivitesinde artış Sankar ve ark. ( 2006 )
                Yağ antioksidan Fare 4 ve 8 mL/kg Lipit peroksidasyonunda, hidroksil radikallerinde ve nitrat miktarında azalma, antioksidan enzimlerde artış Hsu ve Liu ( 2004 ), Hsu ve diğerleri. ( 2008 )
                Yağ antioksidan Fare 0,5 mL/kg Renal lipid peroksidasyonu ve MPO ekspresyonunu inhibe eder ve ROS'u azaltır Hsu ve ark. ( 2011 )
                Yağ antioksidan Fare 8 ml/kg Enzimatik antioksidanlarda artış Hsu ve ark. ( 2005 )
                Yağ antioksidan Fare 200ml Enzimatik antioksidanlarda artış Ahmed ve ark. ( 2006 )
                Yağ antioksidan Fare 5 ve 10 mL/kg Kardiyak endojen antioksidanlarda artış Saleem ve ark. ( 2013 , 2014 )
                Yağ antioksidan Fare %6 w/w ile desteklenmiş %2 w/w yağ TBARS, lipid hidroperoksitler, kan şekerinde azalma, GSH ve heksokinazda artış Ramesh ve ark. ( 2005 )
                Yağ antioksidan Fare 0,4 gr/kg Decrease in serum glutamate and TBARS Hemalatha and Raghunath (2004)
                Oil Antioxidative Rat 10% w/w Reduction in lipid peroxidation, increase in GSH Prasanthi and Rajini (2005)
                Oil Antioxidative Rat 8 mL/kg Decrease in superoxide anion, hydroxyl radical and lipid peroxidation Chandrasekaran et al. (2008)
                Oil Antioxidative Rat 5 mL/kg Increase in GSH and reduction in TBARS Abdou et al. (2012)
                Oil Antioxidative Rat 1.5–3 mL Protection against EMR, decrease in the cholesterol Marzook et al. (2014)
                Oil Antioxidative Rat 1, 2, or 4 mL/kg Increase in TIMP-1 and reduction in MMP-9 Periasamy et al. (2013)
                Oil Antioxidative Rat 1 mL/kg Increase in antioxidative enzymes such as GSH, SOD and CAT Gülcan et al. (2015)
                Oil Antioxidative Rat 0.5 or 1 mL/kg Reduction in superoxide anion, hydroxyl radical and lipid peroxidation Liu and Liu (2017)
                Oil Antioxidative Rat 1 mL/kg Reduction in TBARS and GGT Sotnikova et al. (2009)
                Oil Antioxidative Rat 1, 2, 4, and 8 mL/kg Reduction in LPO and DNA Arumugam and Ramesh (2011)
                Oil Antioxidative Rat 1, 2, and 4 mL/kg Reduction in lipid peroxidation, increase in muscular glutathione and GPx Hsu et al. (2016a, 2016b)
                Oil and alpha-1 lipoic acid Antioxidative Rat 5 mL/kg +100 mg/kg Reduction in AST, ALT, ALP, GGT, cholesterol, TG, LDH, CPK, urea, creatinine Abdel-Daim et al. (2016)
                Oil Antioxidative Mice 20% w/w Increase in antioxidant enzymes such as SOD, reduce in lipid synthesis enzymes Woo et al. (2019)
                Oil Antioxidative Mice 0, 1, 2 and 4 mL/kg Reduction in serum blood urea nitrogen and creatinine Li et al. (2012)
                Oil Antioxidative Mice 4 mL/kg Increase in TAC Mosayebi et al. (2007)
                Sesamolin Antioxidative Rat 1% w/w Reduction of the TBARS Kang et al. (1998)
                Sesamin Antioxidative Rat 2 g/kg Reduction in TBARS, lipid peroxidation, and hemolysis of red blood cell Ide et al. (2003)
                Sesamin derivative (MMEDA) Antioxidative Rat 10 mg/kg Reduction of oxidative 41% of brain damage, reduction in PGE2 Hung et al. (2017)
                Sesamin Antioxidative PC12 cells 25, 50, and 100 μmol Reduction in ROS, NO, and increase in oxidative enzymes, such as SOD, CAT, and GPx Cao et al. (2013)
                Sesamin Antioxidative Endothelial cell 12.5–100 μM Reduction in ox-LDL, NF-κB, and increase in SOD-1 Lee et al. (2009)
                3- bis (3- methoxybenzyl) butane-1, 4-diol Antioxidative PC12 cells 10 μM Inhibition of LDH, lipid peroxidation Hou et al. (2014)
                Sesamin and sesamolin Antioxidative BV-2 microglial cells 50–100 μM Reduction in NO and inhibition of peroxidation Hou, Chen, et al. (2003), Hou, Huang, et al. (2003)
                Sesamin derivative (MMEDA) Antioxidative PC12 cells and BV-2 microglial cells 1, 10, 50 μM Reduction in ROS, PGs, lipid peroxidation, caspase3 and p-JNK Hung et al. (2017)
                Sesamin and sesamolin Antioxidative PC12 cells 0.5, 5, and 50 μM Reduction in LDH and inhibition in MAPK and caspase 3 Hou, Chen, et al. (2003), Hou, Huang, et al. (2003)
                Seed Antiinflammatory Human 40 g Reduction of hs-CRP, IL-6, and MDA Haghighian et al. (2014)
                Oil Antiinflammatory Human 1.5 mL Reduction in pain of knee osteoarthritis Askari et al. (2019)
                Sesamin Antiinflammatory Human 200 mg Reduction in MDA, increase in TAC, and HDL Helli et al. (2016)
                Oil Antiinflammatory Rat 1 mL/kg Reduction in IL-6 and TNF-α Ali et al. (2017)
                Oil Antiinflammatory Rat 2.5 mg/kg Reduction in TNF-α, IL-6, and IL-10 Ismail et al. (2018)
                Oil Antiinflammatory Rat 4 mL/kg Reduction in fibrosis and acidic mucin Periasamy et al. (2013)
                Oil Antiinflammatory Rat 0, 1, 2, or 4 mL/kg Reduction in TNF-α, IL-1β, IL-4 Hsu et al. (2013)
                Oil Antiinflammatory Rat 0, 1, 2, or 4 mL/kg Reduction in IL-6 and Nrf2 Hsu et al. (2016a, 2016b)
                Groundnut oil, rice bran oil Sesame oil Antiinflammatory Rat 10% w/t Reduction in biomarkers of inflammatory and increase in SREBP-2, PPAR-γ Yalagala et al. (2017)
                Oil Antiinflammatory Rat 20% w/w Increase in PPAR-α and CPT-1 Kim et al. (2017)
                Ethanolic extract of seed Antiinflammatory Rat 400 and 800 mg/kg Reduction in IL-6, inflammation of synovial, cartilage Ruckmani et al. (2018)
                Ethanolic extract of seed Antiinflammatory Rat 300 mg/kg Reduction in inflammatory cytokines Botelho et al. (2014)
                Sesamin Antiinflammatory Rat 100 mg/kg Reduction in blood pressure and LDL cholesterol Chen et al. (2005)
                Sesamin Antiinflammatory Rats 15 or 30 mg/kg Reduction in inflammatory markers Hsieh et al. (2011)
                Sesamin Antiinflammatory Rat 10 mg/kg Reduction in cPLA2, 5-LOX, BLT-1, LTC4, TNF-α, IL-1β Yashaswini et al. (2017)
                Sesamin Antiinflammatory Rat 0–30 mg/kg Reduction in mucosal lipid peroxidation, NO, TNF-α, IL-1β, and MPO Hsu et al. (2008)
                Sesamin Antiinflammatory Rat 10 or 20 mg/kg Reduction in MDA, ROS, caspase 3, α-synuclein, and increase in SOD Baluchnejadmojarad et al. (2017)
                Oil Antiinflammatory Rat 10% w/w Increase in ca, P, SOD, CAT, GSH, and reduction in MDA, PC, TNF-α, and CRP El Wakf et al. (2014)
                Sesamin Antiinflammatory Rat 0.1% and 1% w/w Prevention from the production of aortic O2− and endothelial dysfunction Nakano et al. (2003)
                Sesamin Antiinflammatory Rat 30 mg/kg Reduction in TBARS and PC Khan et al. (2010)
                Sesamin Antiinflammatory Rat 40, 80, or 160 mg/kg Reduction in apolipoprotein, ox-LDL and creatinine and increase in SOD Zhang et al. (2016)
                Sesamin Antiinflammatory Rat 5 and 10 mL/kg Decrease in TBARS and increase in GSH, SOD, CAT Lv et al. (2015)
                Sesamin Antiinflammatory Rat 10 mg/kg Reduction in AST, ALT, CRP, TNF-α, IL-1, IL-6, NO, COX-2, iNOS Chiang et al. (2014)
                Sesamin Antiinflammatory Rat 1 mg/kg Reduction in lipid peroxidation Nakai et al. (2003)
                Sesamin Antiinflammatory Rat 1 or 10 μM Reduction in reorganization of chondrocytes and increase thickness of cartilage, production of type II collagen, PGs Phitak et al. (2012)
                Aqueous extract of oil Antiinflammatory Mice 50 and 250 μg/mL Increase in TNF-α, IL-6, MCP-1, and VCAM1 Narasimhulu et al. (2018)
                Aqueous extract of oil Antiinflammatory Mice 0.75 mg Increase in RCT Narasimhulu et al. (2018)
                Aqueous extract of oil Antiinflammatory Mice 10–500 μg/mL Decrease in IL-6, TNFα Selvarajan et al. (2015)
                Oil Antiinflammatory Mice 5% wt Prevention from Δ-5 desaturase activity Chavali et al. (2001)
                Aqueous extract of oil Antiinflammatory Mice 340 mg/kg Increase in metabolism of cholesterol Narasimhulu et al. (2016)
                Ethanol extract of black seeds Antiinflammatory Mice 0.5, 1 and 2 mL/kg Reduction in TNF-α, IL-6, NO, MDA Yang et al. (2018)
                Oil and sesamin Antiinflammatory Mice 100, 200, 400 mg/kg and 50, 100, 200 mg/kg Reduction in the synthesis of PGE2 Henriques Monteiro et al. (2014)
                Sesamin Antiinflammatory Mice 1, 10 and 20 mg/kg Inhibition of the IL-4, IL-5, IL-13, IgE Lin et al. (2014)
                Sesamin Antiinflammatory Mice 10 mg/kg Increase in p-JNK Ma et al. (2014)
                Sesamin Antiinflammatory Mice 0.5% w/w Reduction in ICAM-1 Wu et al. (2010)
                Sesamin Antiinflammatory Mice 30 and 50 ppm Increase in 5-HT, NE, NT3, BDNF, reduction in IBA-1 and inhibition of the inflammatory cytokines Zhao et al. (2019)
                Seed Antiinflammatory Rat 100 and 150 mg/kg Increase in SOD, improve in AST enzyme Ibrahim and Al-feel (2018)
                Aqueous extract of oil Antiinflammatory MDMs and RAW 264.7 macrophages cells 5 and 25, 50 and 250 μg/mL Inhibition of the IL-6, TNF-α, TLR4 and NF-kB Deme et al. (2018)
                Aqueous extract of oil Antiinflammatory RAW 264.7 macrophages cells 50 and 250 μg/mL Inhibition of the uptake of Ox-LDL Narasimhulu et al. (2018)
                Aqueous extract of oil Antiinflammatory RAW 264.7 macrophages cells and HUVECS 100 and 200 μg/mL Reduction in IL-1α, IL-6, TNF-α, MCP-1, VCAM1, and inhibition of the NF-kB Selvarajan et al. (2015)
                Ethanolic extract of sesame (Sesamum indicum L.) coat Antiinflammatory RAW 264.7 macrophages cells 0.01–0.8 mg/mL Inhibition of the NO, iNOS, NF-κB and COX-2 Wang et al. (2007)
                Sesamin Antiinflammatory PC12 and BV-2 cells 0.1, 0.5, 1.0, or 2.0 μM Reduction in ROS, MDA, ERK1/2, P38, caspase 3, COX-2, and PGE2 Hsieh et al. (2011)
                Sesamin derivative (MMEDA) Antiinflammatory PC12 and BV-2 cells 1, 10, and 50 μM Reduction in ROS, p- JNK, caspase 3, and PGE2 Hung et al. (2017)
                Sesamin Antiinflammatory Primary chondrocytes isolated from 12 osteoarthritic patients. 2.5 and 5 μM Inhibition of the PGE2, NO, MMP1, 3, and 13, NF-κB p65, IκBα Kong et al. (2016)
                Sesamin Antiinflammatory PC12 cells cultured with N9 microglial cells 1 pM Reduction in IL-6, IL-1β, and TNF-α Bournival et al. (2012)
                Sesamin Antiinflammatory endothelial cell 12.5–100 μM Reduction in ROS, NF-κB Lee et al. (2009)
                Sesamin Antiinflammatory KBM-5, A293, H1299, HCT116, and RPMI-8226 0–50-μmol/L Inhibition of the NF-κB Harikumar et al. (2010)
                Sesamin Antiinflammatory HUVECs 10 or 100 μM Inhibition of the expression of inflammatory factors Wu et al. (2010)
                Sesamin Antiinflammatory BV-2 microglial cell 50 μM Reduction in TLR4, IL-1β, IL-6, TNF-α, NOS, COX-2, PGE2 and inhibition of the phosphorylation of p-IkB, p-p65 Udomruk et al. (2018)
                Sesamin Antiinflammatory RAW 264.7 macrophage cells 100 μM Increase in HO-1 Fukunaga et al. (2014)
                Metabolite of sesamin Antiinflammatory PC12 cells 10 μM Increase in HO-1and ARE/Nrf2 Hamed et al. (2011)
                Sesamin Antiinflammatory primary chondrocytes isolated from osteoarthritic patients 2.5 and 5 μM Reduction in MMP1, MMP3, MMP13, p38, and p-JNK Phitak et al. (2012)
                Ethanol and aqueous leaf extracts Antiinfection E. coli, K. pneumoni, S. typhii 100, 200 and 400 mg/mL Inhibition in the growth of E. coli, K. pneumonia, S. typhii Ogunsola and Fasola (2014)
                Oil Antiinfection S. aureus 32 mg/mL Inhibition in the growth of S. aureus Heidari Soureshjani et al. (2017)
                Ethanolic, methanolic, and aqueous extracts of leaves Antiinfection S. aureus, streptococcus pneumoniae and candida albicans 0.5 mL Inhibition in the growth of S. aureus, streptococcus pneumoniae, and candida albicans Bankole et al. (2007)
                Oil Antiinfection S. typhii 10 μL/mL Inhibition in the growth of S. typhii Saleem (2011)
                Silver nanoparticles from extract of sesame Antiinfection E. coli 200 ppm Inhibition in the growth of E. coli Bokaeian et al. (2016)
                Oil Antiinfection Helicobacter pylori isolated from patients with chronic gastritis and peptic ulcers 25%, 50%, 75% and 100% w/w Inhibition in the growth of helicobacter pylori Bakkir and Bakkir (2017)
                Seed powder Antiobesity Human 50 g Reduction in weight loss, BMI and waist circumference Shishehbor et al. (2015)
                Methanolic extracts of sesame Antiobesity Rat 200 and 400 mg/kg Reduction in weight of body, glucose, protein, TC, LDL, VLDL, TG Chinnala et al. (2014)
                Oil Antiobesity Rat 1.25 mL/kg Increase in eNOS, NOS Cebova et al. (2018)
                Seed cake Antiobesity Rat 2 or 4 g/kg Reduction in blood glucose, serum cholesterol, serum glucose Bigoniya et al. (2012)
                Oil Antiobesity Mice 1% w/w Reduction in adipose tissue mass, lipid count of serum, and liver, LDL Pan et al. (2015)
                Sesamin Antidiabetic Human 200 mg Reduction in FBS, HbA1c, TNF-α Mohammad Shahi et al. (2017)
                Oil blend Antidiabetic Human 35–40 mL Reduction in FBS, HbA1c, TC, TG, LDL Devarajan, Chatterjee, Singh et al. (2016), Devarajan, Chatterjee, Urata et al. (2016)
                Oil Antidiabetic Human 35 g Reduction in glucose, HbA1c, TC, LDL and TG Sankar et al. (2011)
                Oil Antidiabetic Human 900 mL Reduction in glucose, HbA1c, and increase in insulin Aslam et al. (2019)
                Seed-based breakfast Antidiabetic Human 30 g Reduction in hs-CRP Bahadoran et al. (2015)
                Ardeh Antidiabetic Human 28 g Reduction in TG, AIP, TC, LDL Mirmiran et al. (2013)
                Oil+ sesame butter Antidiabetic Rat 0.5 g/kg + 1.25 g/kg Reduction in glucose Haidari et al. (2016)
                Seeds Antidiabetic Rat 10% w/w Reduction in blood glucose Akanya et al. (2015)
                Seeds Antidiabetic Rat 5% + 10% w/w Reduction in FBG, TC, TG, blood urea, nitrogen, creatinine Ibrahiem (2016)
                Lignans Antidiabetic Rat 0.25% w/w Reduction in lipid profile and production of ROS Dhar et al. (2007)
                Sesamin Antidiabetic Rat 100 and 200 mg/kg Reduction in blood pressure and heartbeat Thuy et al. (2017)
                Oil Antidiabetic Rat 6% w/w Reduction in blood glucose, HbA1c, TBARS, lipid hydro peroxides, glucose-6-phosphatase, and fructose-1, 6-bisphosphatase Ramesh et al. (2005)
                Sesamin Antidiabetic Rat 10–20 mg/kg Increase in NOS and reduction in vascular dysfunction Baluchnejadmojarad et al. (2013)
                Sesamin Antidiabetic Mice 100 or 50 mg kg−1 Reduction in FBG, glycosylated protein in serum, insulin in serum, TG, cholesterol, FFA, MDA Hong et al. (2013)
                Sesamin Antidiabetic Mice 0.2% w/w Inhibition in blood insulin, blood lipid, superoxide anion, NAD (P)H oxidase Takada et al. (2015)
                Sesamin Antidiabetic NIT-1 pancreatic β-cells 200 and 400 μg/mL Reduction in MDA, NO, NOS and iNOS Lei et al. (2012)
                Capsules contain of sesamin Lipid lowering Human 3.6 mg Reduction in the LDL and inhibition in HMGR Hirata et al. (1996)
                White seed Lipid lowering Human 40 g Reduction in TC, LDL, TBARS Alipoor et al. (2012)
                Oil Lipid lowering Human 60 g Reduction in LDL, TG, and increase in HDL Namayandeh et al. (2013)
                Sesamin Lipid lowering Rat 0.2% and 0.4% w/w Inhibition of SREBP-1 and reduction in lipogenic enzymes Ide et al. (2001)
                Seed powder rich from sesamin and sesamolin Lipid lowering Rat 200 g Reduction in the synthesis of lipids Sirato-Yasumoto et al. (2001)
                Oil Lipid lowering Rat 5% or 10% w/w Reduction in TG, cholesterol, LDL, VLDL, AST, ALT, GGT, ALP Taha et al. (2014)
                Sesamin Lipid lowering Rat 2% w/w Increase in the metabolism of glucose, cholesterogenesis and lipogenesis of hepatic and oxidation of FA Ide et al. (2009)
                Seed powder Lipid lowering Rat 200 g/kg Reduction in lipogenic enzymes, TG, MDA Ide et al. (2015)
                Sesamin Lipid lowering Rat 0.5% w/w Reduction in cholesterol absorption Hirose et al. (1991)
                Sesamin Lipid lowering Rat 5% w/w Prevention from Δ- desaturase activity Fujiyama-Fujiwara et al. (1995)
                Sesamin Lipid lowering Rat 155 μM Prevention from Δ- desaturase activity Shimizu et al. (1991)
                Sesamin Lipid lowering Rat 0.5% w/w Increase in fatty acid oxidation, β-oxidation of unsaturated fatty acids, mitochondrial and peroxisomal fatty acid oxidation Ashakumary et al. (1999)
                Sesamin Lipid lowering Rat 0.5% w/w Reduction in linoleic acid, α-linolenic acid, total polyunsaturated fatty acid and increase in dihomo-γ-linolenic acid and β-oxidation of polyunsaturated fatty acid Mizukuchi et al. (2003)
                Sesamin Lipid lowering Rat 0.2% w/w Increase in fatty acid oxidation Ide et al. (2004)
                Sesamin Lipid lowering Rat 2 g Increase in β-oxidation and reduction in lipogenesis Kushiro et al. (2004)
                Sesamin Lipid lowering Rat 0.2% w/w Increase in fatty acid oxidation Kushiro et al. (2002)
                Sesamin Lipid lowering Rat 0.5% w/w Increase in DGLA and prevention from Δ- desaturase activity Umeda-Sawada et al. (1995, 1998)
                Sesamin Lipid lowering Rat 0.2% w/w Increase in ketone body and reduction in β-hydroxybutyrate to acetoacetate, TG, lipid secretion Fukuda et al. (1998)
                Sesamin Lipid lowering Rat 0.2% w/w Increase in biliary excretion of cholesterol, ABCG5, ABCG8 and reduction in ApoB Rogi et al. (2011)
                Oil Lipid lowering Mice 10% w/w Reduction in lipid profile, lipid peroxidation, ALP, GR, and increase in antioxidant activity Korou et al. (2014)
                Bugak (pan-fried unroasted oil) Lipid lowering Mice 20 g/100 g of feed Reduction in TG, TC, LDL, and inhibition of HMGCR and FAS Kim et al. (2014)
                Oil Lipid lowering Mice 17% w/w Increase in ABCA1, ABCA2, Apo E, LCAT, CYP7A1 Narasimhulu et al. (2015)
                Sesame lignans Lipid lowering Rabbit 50 mg/kg Reduction in LDL, the expression of platelet-activating factor acetylhydrolase Nakamura et al. (2020)
                Seed and oil Lipid lowering Rabbit 5% or 10% w/w Reduction in TC, LDL, HDL, SGOT, and SGPT Asgary et al. (2013)
                Seed and oil Lipid lowering Rat 2%, 4%, 6% and 8% w/w Reduction in TC, LDL, HDL, SGOT, and SGPT Aslam et al. (2020)
                Oil Lipid lowering primary macrophages isolated from C57/BL6 mice 1–10 μg/mL Increase in PPARc1, LXRα, and MAPK Majdalawieh and Ro (2015)
                Oil Antihypertensive Human 30 mL Reduction in TG, FBG, HOMA-IR, MDA, hs-CRP, TC, and LDL, and improvement in systolic and diastolic blood pressure Farajbakhsh et al. (2019)
                Capsules with sesamin Antihypertensive Human 60 mg Reduction in systolic and diastolic blood pressure Miyawaki et al. (2009)
                Oil (edible oil) Antihypertensive Human 35 g Reduction in blood pressure, TC, LDL, TG, and TBARS Sankar et al. (2005)
                Black sesame meal capsules Antihypertensive Human 2.52 g Reduction in systolic blood pressure, MDA, and increase in vitamin E Wichitsranoi et al. (2011)
                Oil Antihypertensive Human 35 g Improvement in flow-mediated dilatation and reduction in ICAM Karatzi et al. (2012, 2013)
                Oil blend Antihypertensive Human 35–40 mL Reduction in systolic and diastolic blood pressure, TC, TG, and LDL Devarajan, Chatterjee, Singh et al. (2016), Devarajan, Chatterjee, Urata et al. (2016)
                Sesamin Antihypertensive Rat 0.15% w/w Prevention from cholesterol accumulation Ogawa et al. (1995)
                Sesamin Antihypertensive Rat 1000 mg Reduction in systolic blood pressure, 8-OHdG and occlusion thrombus of cerebral arterioles Noguchi et al. (2001)
                Sesamin Antihypertensive Rat 1% w/w Reduction in systolic blood pressure, the weight of the left ventricle, and vascular hypertrophy Matsumura et al. (1995, 1998, 2000), Kita et al. (1995), Nakano et al. (2004)
                Sesamin Antihypertensive Rat 0.1% w/w Inhibition in the production of vascular superoxide and reduction in systolic blood pressure Nakano et al. (2002)
                Oil Antihypertensive Rat 0.5 or 1 mL/kg Reduction in the systolic, diastolic blood pressure and abnormalities in ECG Liu et al. (2014)
                Sesamin Antihypertensive Rat >94% purity Increase in the biosynthesis of NO and reduction in nitrotyrosine, DHFR, superoxide anion Kong et al. (2015)
                Sesame peptide powder Antihypertensive Rat 1 and 10 mg/kg Reduction in systolic blood pressure and suppression in the activity of angiotensin I-converting enzyme Nakano, Kwak, et al. (2006), Nakano, Ogura, et al. (2006)
                Sesamin Antihypertensive Rat 40, 80 and 160 mg/kg Reduction in p47phox, p22phox, TGF-β1 and increase in eNOS, MDA Zhang et al. (2013)
                Sesamin Antihypertensive Rat 80 and 160 mg/kg Reduction in TGF-β1, phosphorylated Smad2, and increase in total antioxidant capacity, SOD Zhao et al. (2015)
                Sesamin Antihypertensive Rat >94% purity Reduction in MDA, nitro tyrosine, p47phox, and increase in NO Kong et al. (2009)
                Demethylated sesamin metabolites Antihypertensive Rat 50 μM Increase in vasodilation response of endothelium Nakano, Kwak, et al. (2006), Nakano, Ogura, et al. (2006)
                Sesamin Antihypertensive Mice 100 mg/kg Reduction in hypertrophy heart and suppression in fibrosis, inflammation, ROS, phosphorylated ERK1/2, phosphorylated Smad2 Fan et al. (2017)
                Sesamin Antihypertensive HUVECs 1, 5 and 10 μmoL/L Increase in NO, eNO, and suppression in ET-1, ECE-1 Lee et al. (2005)
                Sesamin and sesamolin Antithrombosis Mice (30 mmoL/L:30 mmoL/L) (1 ve 10 mmoL/L; 0,1 ve 1 mmoL/L) Antitrombotik etkiler Kinugasa ve ark. ( 2011 )
                Susam veya yağ antitromboz Tavşan %1 ağırlık/ağırlık Kan pıhtılaşma fibrinojeninde ve kan pıhtılaşma faktörü VII'de azalma Asgary ve ark. ( 2011 )
                • Kısaltmalar: 5-HT, 5-hidroksitriptamin; 5-LOX, 5-lipoksijenaz; 8-OHdG, 8-hidroksi-2'-deoksiguanozin; A293, insan embriyonik böbrek karsinomu; ABCA1, ATP bağlayıcı kaset alt ailesi A üyesi 1; ABCA2, ATP bağlayıcı kaset alt ailesi A üyesi 2; ABCG5, ATP bağlayıcı kaset alt ailesi G üyeleri 5; ABCG8, ATP bağlayıcı kaset alt ailesi G üyeleri 8; AIP, plazmanın aterojenik indeksi; ALP, alkalin fosfataz; ALT, alanin aminotransferaz; Apo E, apolipoprotein E; ARE, antioksidan tepki elemanı; AST, aspartat aminotransferaz; BDNF, beyin kaynaklı nörotrofik faktör; BLT-1, blok lipid taşıma-1; BMI, vücut kitle indeksi; CAT, katalaz; COX-2, siklooksijenaz 2; CPK, kreatin fosfokinaz; cPLA2, sitosolik fosfolipaz A2; CPT-1, karnitin palmitoil transferaz 1; CYP7A1, sitokrom P450 ailesi 7 alt aile A üyesi 1; DGLA, dihomo-y-linolenik asit; DHFR, dihidrofolat redüktaz TGF-β1,E. coli , escherichia coli; ECE-1, endotelin dönüştürücü enzim-1; EKG, elektrokardiyografi; EMR, elektromanyetik radyasyon; eNOS, endotelyal nitrik oksit sentaz; ERK1/2, hücre dışı sinyalle düzenlenen protein kinazlar 1 ve 2; ET-1, endotelin 1; FBS, açlık kan şekeri; FFA, serbest yağ asidi; GGT, y-glutamiltransferaz; GPx, glutatyon peroksidaz; GR, glukokortikoid reseptörleri; GSH, glutatyon; H1299, insan akciğer adenokarsinomu; HB, hemoglobin; HbA1c, hemoglobin A1c; Hct, hematokrit; HCT116, insan epitelyal kolon kanseri; HDL-c, yüksek yoğunluklu lipoprotein kolesterol; HO-1, hem oksijenaz 1; HOMA-IR, homeostatik model değerlendirmesi; hs-CRP, yüksek duyarlıklı C-reaktif protein; HUVECS, insan göbek damarı endotel hücreleri; IBA-1, iyonize kalsiyum bağlayıcı adaptör molekülü 1; ICAM-1, hücre içi adezyon molekülü 1; IgE, immünoglobulin E; IL-10, interleukin10; IL-13, interlökin 13; IL-la, interleukinla MCP-1, monosit kemoatraktan protein-1; IL-4, interlökin 4; IL-5, interlökin 5; IL-6, interlökin 6; iNOS, indüklenebilir nitrik oksit sentaz; IκBa, κB inhibitörü; JNK, c-Jun N-terminal kinazlar;K. pnömoni , klebsiella pnömonisi ; KBM-5, insan kronik miyeloid lösemi; LCAT, lesitin-kolesterol açiltransferaz; LDH, laktat dehidrojenaz; LPO, lipit peroksit; LPS, lipopolisakaritler; LTC4, lökotrien C4; LXRa, karaciğer X reseptörü alfa; MAPK, mitojenle aktive olan protein kinazlar; MDA, malondialdehit; MMP1, 3 ve 13, matris metalopeptidaz 1, 3 ve 13; MMP-9, matris metalopeptidaz 9; MPO, miyeloperoksidaz; NADPH, nikotin amid adenin dinükleotid fosfat; NE, norepinefrin; NF-κB, aktive edilmiş B hücrelerinin nükleer faktör kappa-hafif zincir arttırıcısı; NO, nitrik oksit; Nrf2, nükleer faktör eritroid 2 ile ilişkili faktör 2; NT3, nörotrofin-3; oxLDL, oksitlenmiş düşük yoğunluklu lipoprotein; PC, protein karbonil; PGE2, prostaglandin E2 ;PG'ler, prostaglandinler; PPAR-a, peroksizom proliferatörü ile aktive edilen reseptör alfa; PPAR-y, peroksizom proliferatörü ile aktive edilen reseptör gama; RBC, kırmızı kan hücresi; RCT, ters kolesterol transportu; ROS, reaktif oksijen türleri; RPMI-8226, insan multipl miyelom; S. aureus , staphylococcus aureus ; S. typhii , salmonella typhi; SGOT, serum glutamik oksaloasetik transaminaz; SGPT, serum glutamik pirüvik transaminaz; SOD, süperoksit dismutaz; SREBP-1C, sterol düzenleyici element bağlayıcı protein-1C; SREBP-2, sterol düzenleyici element bağlayıcı protein 2; TAC, toplam antioksidan kapasite; TBARS, tiyobarbitürik asit reaktif maddesi; TG, üç gliserit; TIMP-1, matris metalloproteinazlar 1'in doku inhibitörleri; TLR4, toll benzeri reseptör 4; TNF-a, tümör nekroz faktörü-alfa; VCAM1, vasküler hücre adezyon molekülü 1; VLDL, çok düşük yoğunluklu lipoprotein; WBC, beyaz kan hücresi.
                4.1.1 Klinik çalışmalar


                Diüretik veya beta-blokör alan hipertansiyon ve diyabetli 18 kadın ve 32 erkekte 45 gün boyunca susam yağı (yemeklik yağ) tüketimi kan basıncını, peroksidasyonu, plazma glukoz seviyesini, glikosile hemoglobin (HbA1c), toplam kolesterolü (TC), LDL, TG ve TBARS miktarını düşürdü. Ancak enzimatik (CAT, SOD, GPx) ve enzimatik olmayan antioksidanların (C vitamini; Sankar ve ark., 2006 ) aktivitesini yükseltmiştir . 4.1.2 In vivo çalışmalar


                Erkek Wistar sıçanlarının susam yağı (8 mL/kg, deri altından) ile muamele edilmesinin, SOD ve CAT gibi antioksidan enzimlerin aktivitesini yükseltirken, lipid peroksidasyon miktarını, hidroksil radikallerini ve lipopolisakkaritler (LPS) tarafından indüklenen nitrat miktarını azalttığı bildirilmiştir (Hsu & Liu, 2004 ) . Benzer bir koruyucu etki, çekum ligasyonu ve delinmesiyle indüklenen ve susam yağı (4 mL/kg, oral) ile tedavi edilen lipid peroksidasyonu sıçanlarda görüldü (Hsu ve diğerleri, 2008 ) . Ayrıca, sıçanların susam yağı (0.5 mL/kg) ile oral tedavisi, renal lipid peroksidasyonu ve MPO ekspresyonunu inhibe etti ve gentamisin artı iyotlu kontrast ile indüklenen ROS'u azalttı (Hsu ve diğerleri, 2011) .). İlginç bir şekilde, susam yağının (8 mL/kg) deri altına enjeksiyonu, lipopolisakkaridin neden olduğu böbrek hasarı olan sıçanlarda enzimatik antioksidanların aktivitesini arttırdı (Hsu ve diğerleri, 2005 ) . Ek olarak, susam yağı (200 mL) tüketiminin, orta beyinde sağ ortak karotid arter ve sağ serebral arterin oklüzyonu ile indüklenen iskemili sıçanlarda enzimatik ve enzimatik olmayan antioksidanların aktivitesini arttırdığı gösterilmiştir (Ahmad ve ark., 2006 ) . Ayrıca, susam yağının (5 ve 10 mL/kg) oral uygulaması, sıçanlarda izoproterenolün neden olduğu oksidatif miyokardiyal hasarı azaltmıştır (Saleem ve ark., 2014).). Benzer şekilde, susam yağının (5 ve 10 mL/kg) oral uygulaması, kardiyak endojen antioksidanları yükseltti ve sıçanlarda doksorubisin tarafından indüklenen oksidatif stresi azalttı (Saleem ve diğerleri, 2013 ) . Ayrıca, diyetlerinde ağırlıkça %2 yağ bulunan (%6 ağırlıkça susam yağı içeren) sıçanları beslemek TBARS'ı, lipid hidroperoksitleri ve kan şekerini düşürdü ve karaciğer ve böbrekte GSH ve hekzokinaz aktivitesini arttırdı; ayrıca streptozotosin (STZ) tarafından indüklenen oksidatif stresle de mücadele eder (Ramesh ve diğerleri, 2005 ). Demir hasarı olan sıçanlarda, susam yağı (0.4 g/kg) karaciğerde serum glutamat ve TBARS düzeylerini düşürmüştür (Hemalatha & Raghunath, 2004 ) .

                Susam yağı (%10 w/w) içeren gıda takviyeleri lipit peroksidasyonunu azaltmış ve karaciğer, beyin, timus ve dalakta fenvalat tarafından indüklenen ROS'a karşı GSH miktarını arttırmıştır (Prasanthi & Rajini, 2005 ) .

                Susam yağı (8 mL/kg) kullanımının, sıçan karaciğerinde asetaminofenin neden olduğu ROS'a karşı süperoksit anyonu, hidroksil radikali ve lipid peroksidasyonunu azalttığı gösterilmiştir (Chandrasekaran ve diğerleri, 2008 ) . Ek olarak, oral susam yağı uygulaması (5 mL/kg) GSH düzeyini yükseltirken TBARS miktarını azaltmıştır; ayrıca sıçanların karaciğer ve böbreklerinde sipermetrinin neden olduğu oksidatif strese karşı koruyucu etkiye sahiptir (Abdou ve ark., 2012 ). Susam yağının (1,5-3 mL) sıçanlara ağızdan verilmesinin, kronik elektromanyetik radyasyonun (EMR) neden olduğu ROS'a karşı koruyucu etkiye sahip olduğu ve kandaki kolesterol seviyesini düşürdüğü gösterilmiştir (Marzook ve ark., 2014) .). Ayrıca, matriks metaloproteinaz 1'in (TIMP-1) doku inhibitörlerinin ekspresyonundaki artış ve matris metalopeptidaz 9'un (MMP-9) ekspresyonundaki azalma ve ayrıca monokrotalin tarafından indüklenen ROS'a karşı koruma, sıçan kolonunda 1, 2 veya 4 mL/kg dozda susam yağı ile gösterilmiştir (Periasamy ve diğerleri, 2013 ) . Başka bir çalışmada, susam yağı tedavisinin (1 mL/kg, gavaj) siklosporin-A'ya maruz kalan sıçanlarda kan, karaciğer ve böbrekte GSH, SOD ve CAT gibi antioksidan enzimlerin seviyesini artırarak ROS hasarı üzerinde koruyucu etkileri olmuştur (Gülcan ve ark., 2015 ) . Sıçanların susam yağı (0.5 veya 1 mL/kg, gavaj) ile tedavisinin böbrekteki süperoksit anyonu, hidroksil radikali ve lipid peroksidasyon aktivitesini azalttığı bildirilmiştir (Liu & Liu, 2017 ). Ayrıca susam yağı (1 mL/kg), sıçan plazmasındaki TBARS ve γ-glutamiltransferazı (GGT) azaltarak eklem ve dalak dokularını korumuştur (Sotnikova ve diğerleri, 2017). Susam yağının (1, 2, 4 ve 8 mL/kg) oral uygulaması, sıçan kanında 4-nitrokinolin 1-oksit (4-NQO) tarafından indüklenen lipid peroksidi (LPO) ve DNA hasarını azaltmıştır (Arumugam & Ramesh, 2011 ) . Ayrıca sıçanlarda osteoartrit modelinde susam yağı (1, 2 ve 4 mL/kg) ile besleme lipid peroksidasyonunu azaltmış ve musküler glutatyon ve GPx miktarını arttırmıştır (Hsu ve ark., 2016a , 2016b ) .). 4 hafta süreyle oral susam yağı ve α-1 lipoik asit (5 mL/kg +100 mg/kg) uygulaması, erkeklerin kalp, böbrek ve karaciğerinde diazinonun (20 mg/kg) indüklediği aspartat aminotransferaz (AST), ALT, alkalin fosfataz (ALP), GGT, kolesterol, TG, laktat dehidrojenaz (LDH), kreatin fosfokinaz (CPK), üre, kreatinin düzeyini azaltır. fareler (Abdel-Daim ve diğerleri, 2016 ) . Ayrıca, yüksek lipidli diyetin neden olduğu böbrek hasarından mustarip farelerde, susam yağı (%20 w/w) SOD gibi antioksidan enzimleri arttırmış ve ayrıca lipidlerin sentezinde yer alan enzimlerin ekspresyonunu azaltmıştır; endojen antioksidanları yükseltti (Woo ve diğerleri, 2019). Ayrıca, subkutan susam yağı enjeksiyonu (0, 1, 2 ve 4 mL/kg), ferrik-nitrilotriasetat (Fe-NTA) enjeksiyonunun neden olduğu akut böbrek hasarı fare modelinde serum kan üre nitrojeni ve kreatinin seviyesini düşürdü (Li ve diğerleri, 2012 ) . Bir çalışmada, intraperitoneal (İP) susam yağı enjeksiyonu (4 mL/kg) farelerde toplam antioksidan kapasiteyi (TAC) artırdı (Mosayebi ve diğerleri, 2007). Sesamolin (%1 w/w) ile besleme, farelerin karaciğer mikrozomlarında ATP-Fe3+ /NADPH'nin neden olduğu TBARS'ı azalttı (Kang ve diğerleri , 1998 ) . Ayrıca, sıçanların sesamin (2 g/kg) ile beslenmesi, sıçanlarda dokosaheksaenoik asit (DHA) tarafından indüklenen TBARS konsantrasyonunu, lipid peroksidasyonunu ve kırmızı kan hücrelerinin hemolizini azaltmıştır (Ikeda ve diğerleri, 2003) .). Bir sesamin türevinin (1, 2-bis [(3-metoksifenil) metil] etan-1, 2-dikarboksilik asit) (MMEDA) (10 mg/kg) 90 dakika süreyle IP enjeksiyonu, sağ ortak karotid arter ve sağ serebral arterin oklüzyonu ile indüklenen iskemili sıçanda PGE2'yi ve beyin oksidatif hasarı azalttı (Hung ve diğerleri, 2017 ) . 4.1.3 İn vitro çalışmalar


                Sesamin (25, 50 ve 100 μmol) ile tedavinin PC12 hücrelerinde ROS, NO üretimini azalttığı ve SOD, CAT ve GPx gibi oksidatif enzimlerin seviyesini yükselttiği bildirilmiştir (Cao ve diğerleri, 2013 ) . Ayrıca, sesamin (12.5–100 μM) ile tedavi endotel hücresinde oksitlenmiş düşük yoğunluklu lipoprotein (oxLDL), NF-κB'yi azaltmış ve SOD-1'i arttırmıştır (Lee ve ark., 2009). Ek olarak, sesamin türevi, 3-bis (3-metoksibenzil) bütan-1, 4-diol (10 μM) ile tedavi, salınan asetilkolin ve azalan LDH, salınan MDA ve kalsiyum dahil olmak üzere çoklu mekanizmalar yoluyla Aβ1-42 kaynaklı sitotoksisite ve apoptoza karşı koruma sağlar. Türev susam, Ap'ye maruz kalan PC12 hücrelerinde c-Jun N-terminal kinazları (JNK), ERK, p38 MAPK yollarını ve Bax ekspresyonunu önemli ölçüde baskılayabilir (Hou ve diğerleri, 2014 ) . 50–100 μM sesamin ve sesamolin hacmi, NO üretimini azaltarak ve LPS tarafından indüklenen BV-2 mikroglial hücrelerde lipid peroksidasyonunu inhibe ederek bir antioksidan aktiviteye sahiptir (Hou, Chen, ve diğerleri, 2003; Hou, Huang, ve diğerleri, 2003 ) .). Ayrıca, MMEDA (1, 10, 50 μM) ile ön tedavi, iskemik ve hipoksik nöronal yaralanmanın neden olduğu PC12 ve BV-2 mikroglial hücrelerinde ROS, PG salınımını, lipid peroksidasyonunu, kaspaz 3 miktarını ve JNK'nın aktif formunu azaltır (Hung ve diğerleri, 2017 ) . Benzer şekilde, sesamin ve sesamolin (0.5, 5 ve 50 uM) ile ön tedavi, LDH salınımını azaltarak ve mitojenle aktive olan protein kinazları (MAPK) yolunu ve kaspaz 3'ü inhibe ederek PC12 hücrelerinde hidrojen peroksit (H202) tarafından indüklenen hipoksiye karşı korunur (Hou, Chen, ve diğerleri, 2003; Hou , Huang ve diğerleri , 2003 ) .

                Yukarıdaki çalışmalara göre, susam yağındaki bileşikler GPx, karaciğer belirteçleri (AST ALT) aktivitesini iyileştirerek antioksidatif etkiye sahip olduğundan, susam tohumlarının SOD, glutatyon (GSH), GPx, CAT gibi oksidatif enzimlerin ve tiyobarbitürik asit reaktif maddesi (TBARS), malondialdehit (MDA) sesamin ve sesamolin gibi oksidatif faktörlerin seviyesini düzenleyerek ROS'u azalttığı sonucuna varılabilir. , ALP ve GGT) ve MDA, lipid peroksidasyonu ve süperoksit üretimini azaltmak (Şekil 1 ) . Detaylar görselin altındaki başlıkta ŞEKİL 1
                Şekil görüntüleyicide açPriz
                Susam ve biyoaktif bileşiklerin (sesamin ve sesamolin) etki mekanizması. Susam ve iltihap


                Endotel hücrelerinin monositler ve T lenfositler dahil olmak üzere beyaz kan hücreleri ile olası bağlantısı, vasküler düz kasa (VASM-1) bağlı bir molekül aracılığıyla vasküler inflamasyon sırasında gerçekleşir. Beyaz kan hücreleri, metalloproteinaz ve sitokin üretimini uyaran hücre dışı matrisin sindirimi yardımıyla arterin intimasına göç eder. Monosit ve T lenfositler, LDL de dahil olmak üzere oksitlenmiş lipoproteinleri yutmaya başlar ve köpük benzeri hücreler üretir ve bunların birikmesi lezyonun ilerlemesi ile ilişkilidir. Aterosklerotik plak hücreleri (monositler, düz kas hücreleri ve T hücreleri) IL-6, kompleman faktörü, sitokinler, C-reaktif protein (CRP) ve NO salgılar (Hansson ve diğerleri, 2006; Libby ve diğerleri, 1995; Speidl ve diğerleri , 2005 ). Makrofajlar, interlökin 1 (IL-1) ve tümör nekroz faktörü-alfa (TNF-α) üreterek plak agregasyonunu şiddetlendirir. Aktive edilmiş lenfositler, ilerlemiş aterosklerotik lezyonlarda görülen polipeptit büyüme faktörlerini serbest bırakarak düz vasküler kas hücrelerinin proliferasyonunu ve yoğun bir hücre dışı substrat üretimini uyarır (Hansson ve diğerleri, 2006; Petyaev ve diğerleri, 2018; Tong ve diğerleri , 2020 ; Tablo 2 ) . 4.2.1 Klinik çalışmalar


                2 ay boyunca susam tohumu (40 g) tüketiminin diz osteoartritli 50 kişide MDA, yüksek duyarlıklı C-reaktif protein (hs-CRP) ve IL-6'yı azalttığı gösterilmiştir (Haghighian ve ark., 2014 ) . Ayrıca diz osteoartritli 104 kişinin 4 hafta süreyle susam yağı (1,5 mL) ile tedavisinin ağrıyı azalttığı bildirilmiştir (Askari ve ark., 2019) .). Ayrıca sesamin tüketimi (200 mg/gün) romatoid artritli hastalarda kardiyovasküler risk faktörlerine karşı koruma sağlayabilir. Sesamin grubunda MDA'da azalma, TAC ve yüksek dansiteli lipoprotein kolesterol (HDL-K) düzeylerinde yükselme bildirildi. Sistolik kan basıncını ve lipid profillerini (trigliseritler, toplam kolesterol ve düşük yoğunluklu lipoprotein kolesterol (LDL-C)) azaltabilir. Vücut ağırlığının ve ilgili faktörlerin temel değerleri de önemli ölçüde azaldı (Helli ve diğerleri, 2016 ). 4.2.2 In vivo çalışmalar


                Romatoid artritten mustarip sıçanlara susam yağı (1 mL/kg) ve metotreksat (MTX) (1 ve 2 mg/kg) ile oral uygulama IL-6'yı düşürdü ve TNF-α da IL-10 miktarını artırdı (Ali ve diğerleri, 2017 ) . Başka bir çalışmada, sol ayağa tam Freund adjuvanının enjeksiyonu ile indüklenen romatoid hasardan muzdarip farelerde, 2,5 mg/kg dronabinol (Δ9-THC)/susam yağının 21 gün boyunca oral yoldan verilmesi, eritrositlerin ve TNF-α, IL-6 ve IL-10 dahil inflamatuar sitokinlerin birikimini azaltmıştır. Ayrıca CAT, SOD ve GSH gibi antioksidan enzimlerin aktivitesini artırarak oksidatif stresi önemli ölçüde azaltmıştır (Ismail ve ark., 2018 ).). Akut kolitten mustarip sıçanlarda, susam yağının (4 mL/kg) oral yoldan verilmesi, sıçanlarda 2, 4, 6-tri-nitro benzen sülfonik asitlerin (TNBS) neden olduğu enflamasyonu, fibrozu ve asidik müsini azaltmıştır (Periasamy ve diğerleri, 2013 ) . Ayrıca, susam yağı (0, 1, 2 veya 4 mL/kg) ile oral tedavi, farelerde monosodyum ürat monohidrat (MSU) kristalinin neden olduğu TNF-α, IL-1β, IL-4 ve akut inflamatuar yanıtı azaltır (Hsu ve diğerleri, 2013 ) . Ek olarak, susam yağı (0, 1, 2 veya 4 mL/kg) ile oral tedavi, osteoartritli sıçanda musküler IL-6'yı, nükleer faktör eritroid 2 ile ilişkili faktör 2 (Nrf2) ekspresyonunu ve medial menisküs transeksiyonunun neden olduğu ROS'u azaltmıştır (Hsu ve diğerleri, 2016a , 2016b )). Erkek Wistar farelerinin diyetine ağırlıkça %10 yer fıstığı yağı, pirinç kepeği yağı ve susam yağı eklenmesi, sitokinler, eikosanoidler, NF-κB'deki azalma ve sterol düzenleyici element bağlayıcı protein-2 (SREBP-2), PPAR-γ genlerinin ifadesindeki artışla doğrulanan lipid ve iltihabı azalttı (Yalagala ve diğerleri, 2017 ) . Farelerin susam yağı (%20 w/w) ile beslenmesi, lipojenik transkripsiyon faktörlerinin ekspresyonunu azalttı ve lipitlerin β-oksidasyonunda yer alan enzimler ayrıca SREBP-1'in modülasyonunu inhibe etti ve yüksek yağlı diyetin neden olduğu hepatik endoplazmik retikulum stresinde peroksizom proliferatörü ile aktive olan reseptör alfa (PPAR-α) ve karnitin palmitoil transferaz 1 (CPT-1) ekspresyonunu yükseltti (Kim ve diğerleri, 2017) .). Susam tohumu etanol ekstresi (400 ve 800 mg/kg) ile tedavi, pençe hacmini, beyaz kan hücrelerinin sayısını, eritrosit sedimantasyon hızını, IL-6'yı, eklem iltihabını, kıkırdak yaralanmasını ve artmış kırmızı kan hücresi sayısını, farelerde Freund'un tam adjuvanının neden olduğu artrite karşı vücut ağırlığını azalttı (Ruckmani ve diğerleri, 2018 ) . Ayrıca, susam tohumu etanol ekstraktının (300 mg/kg) IP enjeksiyonu, sıçanlarda endotelin-1 (ET-1) tarafından indüklenen iskemiye karşı inflamatuar sitokinlerin miktarını azaltmıştır (Botelho ve ark., 2014). sıçanlarda tetraklorür (CCl4) (Chen ve diğerleri , 2015). Ayrıca sesamin tüketimi (15 veya 30 mg/kg), farelerde kainik asidin neden olduğu inflamasyon (MDA) ve beyin hasarını azalttı (Hsieh ve diğerleri, 2011 ) . Oral sesamin sondası (10 mg/kg) sitozolik fosfolipaz A2 (cPLA2), 5-lipoksijenaz (5-LOX), blok lipid transport-1(BLT-1), lökotrien C4 (LTC4), TNF-α miktarını, monosit kemoatraktan protein-1(MCP-1) ve IL-1β sentezini sıçanlarda LPS'nin neden olduğu oksidatif strese karşı azaltır (Yashaswini ve diğerleri, 2017 ) . Ayrıca sıçanlara sesamin (10 veya 20 mg/kg) ön tedavisi MDA, ROS, kaspaz 3 aktivitesi ve α-sinüklein proteinlerinin ekspresyonunu azaltmış, 6-hidroksidopamin (6-OHDA) ile beyin lezyonlarının oluşumuna karşı SOD aktivitesini yükseltmiştir (Baluchnejadmojarad ve ark., 2017) .). Ayrıca 2 ay boyunca soya yağı (%15 a/a) + susam yağı (%10 a/a) ile besleme Ca, P miktarlarını ve SOD, CAT ve GSH ekspresyonlarını artırmıştır. Ancak ovariektomi uygulanmış sıçanlarda östrojen hormonu eksikliğinin neden olduğu kemik kaybına karşı MDA, protein karbonil (PC), TNF-α ve CRP düzeylerini düşürmüştür (El Wakf ve ark., 2014 ) . Sesamin tüketimi (%0.1 ve %1 w/w), hipertansif sıçanlarda DOCA/tuz tarafından indüklenen aortik O2 üretiminin artmasını ve endotel disfonksiyonunu önledi (Nakano ve diğerleri, 2003 ) . Ek olarak, sesamin (30 mg/kg) ile oral tedavi, sıçanlarda geri dönüşümlü orta serebral arter tıkanıklığının neden olduğu beyin hasarına karşı TBARS ve PC'yi azaltır (Khan ve ark., 2010) .) İntragastrik sesamin enjeksiyonu (40, 80 ve 160 mg/kg), sıçanlarda yüksek yağlı diyetin neden olduğu dislipidemi ve böbrek hasarına karşı TC, TG, LDL, apolipoprotein, oxLDL ve kreatinin miktarını azaltmış ve SOD seviyesini arttırmıştır (Zhang ve ark., 2016 ) . Sıçanlarda CCL 4'ün neden olduğu oksidatif karaciğer hasarına karşı IP sesamin enjeksiyonu (5 ve 10 mL/kg) TBARS seviyesini düşürmüş ve GSH, SOD ve CAT'i arttırmıştır (Lv ve ark., 2015 ) . Gastrik sesamin sondası (10 mg/kg) AST, ALT, CRP, TNF-α, IL-1, IL-6, NO, ROS, p-JNK, p38, MAPK, COX-2, indüklenebilir nitrik oksit sentazı (iNOS) azalttı ve sıçanlarda LPS/Pb'nin neden olduğu akut karaciğer hasarında büyüme durması ve DNA hasarı ile mücadele etti (Chiang ve ark., 2014 )). Oral sesamin uygulaması (1 mg/kg) sıçan karaciğerinde lipid peroksidasyonunu ve ROS'u azaltmıştır (Nakai ve diğerleri, 2003 ). Sesamin (1 veya 10 μM) ile eklem içi enjeksiyon, kondrositlerin yeniden organizasyonunu azaltmış ve sıçan kıkırdak dokusunda papain tarafından indüklenen osteoartrite karşı kıkırdak kalınlığını, tip II kollajen üretimini ve PG'leri arttırmıştır (Phitak ve ark., 2012 ). Ek olarak, susam yağının sulu ekstraktının (50 ve 250 μg/mL) tüketiminin, enflamatuar proteinlerin ekspresyonunu aşağı doğru düzenleyerek antienflamatuar etkilere sahip olduğu ve düşük yoğunluklu lipoprotein reseptörü nakavtında (LDLR −/−) TNF-α, IL-6, MCP-1 ve vasküler hücre adezyon molekülü 1'i (VCAM1) azalttığı gösterilmiştir.) yüksek yağlı diyetle indüklenen aterosklerozu olan fareler (Narasimhulu ve diğerleri, 2018 ). Benzer şekilde, sulu bir susam yağı ekstraktının (0,75 mg) tüketimi, enflamatuar genlerin ekspresyonunu azalttı ve artan kolesterol metabolizması, yüksek yağlı diyetle indüklenen aterosklerozu olan LDLR -/- farelerde kolesterol taşınmasını (RCT) da tersine çevirdi (Narasimhulu ve diğerleri , 2018 ) . Susam yağı ekstraktının (10–500 μg/mL) IP enjeksiyonu, farelerde LPS tarafından indüklenen IL-6 ve TNFa dahil inflamatuar faktörleri azaltmıştır (Selvarajan ve diğerleri, 2015 ) . Ayrıca susam yağı tüketimi (ağırlıkça %5) Δ-5 desatüraz aktivitesini önler ve farelerin çekal ligasyonu ve delinmesinde proinflamatuar dienoik eikosanoidlerin üretimini azaltır (Chavali ve ark., 2001 ). (LDLR −/− ) farelerin sulu bir susam yağı özü (340 mg/kg) ile beslenmesi, lipid metabolizmasında yer alan genlerin ekspresyonunu artırarak lipid profilini düzenler ve kolesterol taşınmasını tersine çevirir ve yüksek yağlı diyetle indüklenen aterosklerozla savaşır (Narasimhulu ve diğerleri, 2016 )). Ayrıca, çörek otunun etanol ekstraktı (0.5, 1 ve 2 mL/kg) ile beslenmesi, karaciğerde serum insülin, TNF-α, IL-6, NO, MDA, glikoz ve lipid birikimini azaltmıştır. Ayrıca, fruktozla beslenen farelerde alkolsüz yağlı karaciğer hastalığında p-JNK1/2/3, fosfo-NF-κB p65, fosfo-insülin reseptörü substrat 1 (IRS1), fosfo-IKK α/β ekspresyonunu zayıflattı ve x-box-bağlayıcı protein 1 (XBP1), GSH, C vitamini, Nrf2, SOD, CAT ve GPx seviyesini yükseltti (Yang ve ark., 2 018 ) . Pençe ödeminden mustarip farelerde, susam yağı (100, 200 ve 400 mg/kg) ve sesamin (50, 100 ve 200 mg/kg) ile oral uygulama, PGE2 sentezini, plevral eksüda üretimini ve lökosit göçünü engellemiştir (Henriques Monteiro ve diğerleri, 2014) .). Sesamin'in (1, 10 ve 20 mg/kg) IP enjeksiyonu, astımlı farelerde interlökin 4 (IL-4), interlökin 5 (IL-5), interlökin 13 (IL-13), serum immünoglobulin E (IgE) ekspresyonunu önledi ve astımlı farelerde ovalbumin (OVA) tarafından indüklenen alerjene ve hava yolu iltihabına karşı eozinofillerin ve diğer inflamatuar hücrelerin sayısını azalttı (Lin ve diğerleri, 2014 ) . Ek olarak, sesamin (10 mg/kg) ile oral tedavi, farelerde CCl4 tarafından indüklenen oksidatif strese karşı p-JNK seviyesini arttırdı (Ma ve diğerleri, 2014 ) . Sesamin tüketimi (%0,5 w/w), apolipoprotein E (apoE) eksikliği olan farelerde yüksek yağlı diyetlerin neden olduğu aterosklerozda hücre içi adezyon molekülü 1'in (ICAM-1) ekspresyonunu ve intima kalınlığını azaltmıştır (Wu ve diğerleri, 2010) .). Başka bir çalışmada, sesamin (30 ve 50 ppm) ile oral tedavi, 5-hidroksitriptamin (5-HT), norepinefrin (NE), nörotrofin-3 (NT3), beyin kaynaklı nörotrofik faktör (BDNF) miktarını artırır ve depresyonu iyileştirir. Ek olarak, iyonize kalsiyum bağlayıcı adaptör molekül 1'in (IBA-1) ekspresyonunu azalttı ve farelerde kronik öngörülemeyen hafif stresin neden olduğu depresyona karşı enflamatuar sitokinlerin (iNOS, COX-2, TNF-α ve IL-1β) oluşumunu baskıladı (Zhao ve diğerleri, 2019) .). Çiğ, kavrulmuş ve fermente susam tohumları (100 ve 150 mg/kg diyet) ile tedavi, sıçanlarda aterojenik diyetin neden olduğu aterosklerozda AST enzimini iyileştirmiş ve SOD dahil oksidatif enzimlerin aktivitesini arttırmıştır. Ayrıca farelerde 0,1 mL formalin (%4) ile indüklenen iltihaplanmaya karşı pedalın etkinliğini iyileştirmiştir (Ibrahim ve ark., 2020 ). 4.2.3 İn vitro çalışmalar


                Susam yağının sulu ekstraktı (2 saat boyunca 5, 25, 50 ve 250 μg/mL) ile ön muamele, monosit türevli makrofajlarda (MDM'ler) ve RAW 264.7 makrofaj hücrelerinde IL-6, TNF-α, TLR4 ve NF-kB'yi önleyerek LPS'nin neden olduğu enflamasyona karşı antiinflamatuar ve antiaterosklerotik özelliklere sahiptir (Deme ve ark. 2018 ) . Benzer şekilde, sulu bir susam yağı ekstresi (50 ve 250 μg/mL) ile ön tedavi, Ox-LDL tarafından indüklenen ateroskleroza karşı RAW 264.7 fare makrofajlarında Ox-LDL alımını inhibe etti (Narasimhulu ve diğerleri, 2018 ) . Susam yağının sulu ekstraktı (100 ve 200 μg/mL) ile muamele, RAW 264.7 fare makrofajlarında ve insan göbek damarı endotel hücrelerinde (HUVECS; Selvarajan ve diğerleri, 2015) LPS tarafından indüklenen IL-1α, IL-6, TNF-α, MCP-1, VCAM1'i azalttı ve inhibe eden NF- kB'yi). Ayrıca, susam kabuğunun etanol ekstraktı (0,01–0,8 mg/mL) ile ön muamele, GSH, GPx, GSH redüktaz (GR), GSH transferaz (GST'ler), CAT miktarını yükseltti ve RAW 264.7 makrofajlarda LPS tarafından indüklenen inflamatuar mediatörlerin üretimine karşı NO, iNOS, NF-κB ve COX-2 oluşumunu baskıladı (Wang ve diğerleri, 2007 ) . Sesamin (0.1, 0.5, 1.0 veya 2.0 μM) ile ön tedavi, PC12 ve BV-2 hücrelerinde kainik asit tarafından indüklenen ROS, MDA, hücre dışı sinyalle düzenlenen protein kinazlar 1 ve 2 (ERK1/2), P38, kaspaz 3, COX-2 ve PGE2'yi azalttı (Hsieh ve diğerleri, 2011 )). Ayrıca, sesamin (2.5 ve 5 uM) ile tedavi, 12 osteoartritik hastadan izole edilen primer kondrositlerde PGE2, NO, matris metalopeptidaz 1, 3 ve 13 (MMP1, 3 ve 13), NF-κB p65 ve IL-1β tarafından indüklenen κB (IκBa) inhibitörünün oluşumunu inhibe etti. Ayrıca Nrf2 ve heme oksijenaz 1(HO-1) ekspresyonunu arttırmıştır (Kong ve diğerleri, 2016 ). Sesamin (1 pm ) ile ön muamele, N9 mikroglial hücrelerle kültürlenen PC12 hücrelerinde IL-6, IL-1β ve TNF-a proteinlerinin sona ermesini azalttı (Bournival ve diğerleri, 2012 ) . Benzer şekilde, sesamin (12.5–100 μM) ile ön tedavi, endotel hücrelerinde ox-LDL tarafından indüklenen iltihaplanma ve oksidatif strese karşı ROS, NF-κB ve aktive edilmiş SOD1 üretimini azaltmıştır (Lee ve diğerleri, 2009) .). Benzer şekilde, sesamin (0-50-umol/L) ile ön tedavi, KBM-5 (insan kronik miyeloid lösemi), A293 (insan embriyonik böbrek karsinomu), H1299 (insan akciğer adenokarsinomu), HCT116 (insan epitelyal kolon kanseri) ve RPMI-8226'da (insan multipl miyelom; Harikumar ve ark. 2010). Enflamasyon sırasında TNF-α, insan antijeni R (HuR) translokasyonunu ve bunun beyaz kan ve aortik endotel hücrelerinin yapışmasını ve sonunda enflamasyonu ve aterosklerozu artıran ICAM-1 mRNA'nın 3'UTR'sine bağlanmasını artırır. Sesamin, ICAM-1 geninin ekspresyonunu hem eksojen hem de endojen olarak azaltmış, böylece beyaz kan hücrelerinin aort endotel hücrelerine yapışmasını zayıflatmıştır. HUVEC'lerin sesamin (10 veya 100 uM) ile ön tedavisinin, enflamatuar faktörlerin ekspresyonunu inhibe ettiği gösterilmiştir: NF-kB p65 ve CAM-1, ERK12 ve p38'i aşağı doğru düzenleyerek hücre adezyonunu da azaltmıştır (Wu ve ark., 2010 ) . Sesamin (50 uM) ile ön işlem, toll benzeri reseptör 4 (TLR4), IL-1β, IL-6, TNF-α, NOS, COX-2 miktarı, PGE 2 oluşumunu azaltırve p-IkB, p-p65'in fosforilasyonunu inhibe eder. Ek olarak, BV-2 mikroglial hücresinde LPS tarafından indüklenen nörotoksisiteye karşı JNK ve p38'in fosforilasyonunu azaltmıştır (Udomruk ve diğerleri, 2018 ). Çalışma, sesamin (100 μM) ile ön tedavinin HO-1 protein miktarını arttırdığını ve RAW 264.7 makrofaj hücrelerinde LPS tarafından indüklenen iltihaplanmaya karşı her yerde bulunmasını baskılayarak HO-1 proteininin bozulmasını durdurduğunu bildirdi (Fukunaga ve diğerleri, 2014 ) . Benzer şekilde, sesamin metaboliti (10 μM) ile ön tedavi HO-1 protein miktarını arttırdı ve PC12 hücrelerinde H202 tarafından indüklenen oksidatif strese karşı antioksidan tepki elemanını (ARE/Nrf2) aktive etti (Hamed ve diğerleri , 2011 ) .). Sesamin (2.5 ve 5 uM) ile ön tedavi, osteoartritik hastalardan izole edilen primer kondrositlerde IL-1β tarafından indüklenen inflamasyona karşı MMP1, MMP3, MMP13, p38 ve JNK ekspresyonunu azaltmıştır (Phitak ve diğerleri, 2012 ) . Ayrıca, susam özü (1-100 μg/mL) ile ön tedavi Th1 sitokin salgılanmasını artırdı, Th2 sitokin, IL-6, TNFa ve NO salgılanmasını inhibe etti ve splenositlerin çoğalmasını ve BALB/c ve C57BL/6 farelerinden izole edilen birincil makrofajların işlevini artırdı (Majdalawieh ve diğerleri, 2020 ) .

                Yukarıda incelenen çalışmalara göre, susam yağının antiinflamatuar etkilerinin, interlökin 1α (IL-1α), interleukin 1β (IL-1β), IL-6 ve TNF-α dahil olmak üzere preinflamatuar sitokinlerdeki azalmaya bağlı olduğu görülmektedir. Çalışmalar, sesamol ve sesamolin dahil olmak üzere susam yağı ve lignanların COX-2'yi inhibe ederek antiinflamatuar etkilere sahip olduğunu göstermektedir. Sesaminin Δ5-desatüraz aktivitesini inhibe ederek dihomo-γ-linolenik asit (DGLA) birikimini tetiklediği ve DGLA'nın hücre zarında araşidonik aside dönüşümünü engellediği gösterilmiştir. Sonunda, inflamatuar faktörlerin üretimini azaltır (Bankole ve ark., 2007).). Ek olarak, inflamatuar ajanlar tarafından başlatılan sesamin tarafından NF-κB yolunun modülasyonu ele alınmıştır. Beta ile aktive olan kinaz 1 (TAK1) proteininin aktivitesi inhibe edildiğinde, nükleer faktör-κB (IκB) kinaz (IKK) inhibitörünün fosforilasyonunun inhibisyonu yoluyla NF-κB aktivitesini azaltır (Harikumar ve diğerleri, 2010; Şekil 1 ) . Susam ve enfeksiyon


                Ateroskleroz oluşumunda enfeksiyon en önemli konulardan biridir. Vasküler hücrelerde bakteri veya virüslerin büyümesi, ateroskleroz promotörleri olan sitokinlerin ve CRP'nin salgılanmasını uyarır. Chlamydia pnömoni , Porphyromonas gingivalis , Helicobacter pylori , influenza A virüsü, hepatit C, sitomegalovirüs ve insan immün yetmezlik virüsü, kardiyovasküler hastalık riskini artıran indükleyiciler olarak tanımlanmıştır (Campbell & Rosenfeld, 2015 ) . Susamın etanol ve sulu yaprak özleri (100, 200 ve 400 mg/mL), Escherichia coli , Klebsiella pneumonia ve Salmonella typhi'nin (Ogunsola & Fasola, 2014 ). Ayrıca susam yağının (32 mg/mL) Staphylococcus aureus ( S. aureus ) büyümesini baskıladığı gösterilmiştir(Heidari Soureshjani ve ark., 2017 ). Ayrıca, etanol, metanol ve sulu susam yaprağı ekstraktlarının S. aureus , Streptococcus pneumoniae ve Candida albicans'a karşı inhibitör etkileri vardır (Bankole ve diğerleri, 2007 ). Ek olarak, susam yağı (10 μL/mL) S. typhii'ye karşı güçlü bir şekilde savaşmıştır(Saleem, 2011 ). Başka bir çalışmada, susam özü (200 ppm) içeren sentezlenmiş gümüş nanopartiküllerin beş tür E. coli izolatı ile savaştığı ortaya çıktı.(Bokaeian ve diğerleri, 2016 ). Susam yağı (%25, %50, %75 ve %100 ww) , kronik gastrit ve peptik ülseri olan hastalardan izole edilen Helicobacter pylori'ye karşı inhibitör etkiye sahiptir (Bakkir & Bakkir, 2017 ; Tablo 2 ). Susam ve obezite


                Obezite, yüksek tansiyon, kolesterol anormallikleri ve tip 2 diyabet gibi kalp hastalığı risk faktörlerini artırır. Ek olarak, fazla kilolu olmak metabolik sendrom riskini artırır (yüksek tansiyon, düşük HDL kolesterol, yüksek TG, yüksek kan şekeri ve yüksek bel ölçüsü dahil olmak üzere kalp hastalığı için bir grup risk faktörü). Ayrıca obeziteden kaynaklanan yüksek tansiyon, kan damarlarında plak oluşumunu hızlandırarak onları yırtılmaya yatkın hale getirdi. Ayrıca vücutta obezitenin neden olduğu gizli iltihaplanma, damar sertliği ve damar duvarlarında plak sertleşmesi riskini artırır. Obezite ayrıca kanda vasküler plağı parçalayabilen ve kalp krizine neden olabilecek inflamatuar faktörlerin salınmasına neden olur. Ek olarak, lipid metabolizmasındaki anormallikler, vasküler endotel fonksiyonu, 2015 ) Tablo 2 . 4.4.1 Klinik çalışmalar


                Metabolik sendromlu 46 kadında 6 hafta boyunca susam tohumu tozu (50 g) tüketiminin kilo kaybını, VKİ'yi ve bel çevresini azalttığı gösterilmiştir (Shishehbor ve ark., 2015 ) . 4.4.2 In vivo çalışmalar


                Susamın metanol özleri (200 ve 400 mg/kg) ile besleme, yüksek yağlı diyetle beslenen sıçanlarda vücut ağırlığını, glikoz, protein, TC, LDL, çok düşük yoğunluklu lipoprotein (VLDL), TG miktarını ve yüksek HDL miktarını azalttı (Chinnala ve diğerleri, 2014 ) . Ayrıca, susam yağı (1,25 mL/kg) ve simvastatin (15 mg/kg) ile birlikte tedavi, obez Zucker farelerinde fosforlanmış endotelyal nitrik oksit sentaz (eNOS) proteininin ekspresyonunu, NOS aktivitesini yükseltti ve oksidatif yükü azalttı (Cebova ve diğerleri, 2018 ) . Ayrıca susamlı küspe tüketimi (2 veya 4 g/kg) yüksek fruktozlu diyetle beslenen sıçanlarda kan glukozu, serum kolesterolü, serum glukozu seviyesini düşürerek glukoz toleransını harekete geçirmiştir (Bigoniya ve ark., 2012) .). Ayrıca, susam yağı (%1 w/w) yağ dokusu kütlesini, serum ve karaciğerin lipid sayısını, LDL'yi azalttı ve aşağıdakiler dahil olmak üzere lipojenik enzimlerin ekspresyonunu inhibe etti: PPAR-γ, sterol düzenleyici element bağlayıcı protein-1C (SREBP-1C), stearoil-CoA desatüraz 1(SCD-1), Fas, asetil-CoA karboksilaz (ACC), lizinürik protein intoleransı (LPI) ve C5'te malik enzim Yüksek yağlı diyetle beslenen 7BL/6 fareler (Pan ve diğerleri, 2015 ) .

                Yukarıdaki çalışmalara dayanarak, susam tohumlarının ve ürünlerinin tüketiminin kilo kontrolünde önemli bir rol oynadığı görülmektedir. Ayrıca susam lignanları, yağın yağ yakıcı etkisinden dolayı kilo kaybına ve mitokondri iç zarındaki ayrışan proteinlerin ekspresyonunda artışa neden olabilir. Bu proteinler oksidatif fosforilasyon için gerekli enerjiyi sağlar. Ayrıca susamdaki lignanlar, lipitlerin β-oksidasyonunda yer alan enzimlerin ekspresyonunu arttırır ve yağ yakımı için hücresel kapasiteyi arttırır (Kushiro ve diğerleri, 2004 , 2002 ; Şekil 1 ). Susam ve diyabet


                Diyabetli kişilerde ateroskleroz gelişme olasılığı diyabetik olmayanlara göre iki ila altı kat daha fazladır. Diyabetli bir kişide aterosklerozu hızlandırma süreci, NO üretimindeki azalmaya bağlanabilir. Normalde damar endotel hücrelerinden salgılanan NO, damarların genişlemesine ve atardamarların içinde düzgün kan akışına neden olur. NO ise trombosit ve lökositlerin kan damarlarının duvarlarıyla reaksiyonunu korur ve bunu intravasküler hasar izler. Diyabetik hastalarda NO düzeyi azalır bunun sonucunda vazodilatasyon sürecindeki bozulma trombosit agregasyonunu artırır (Hamed ve ark. 2011).). Ayrıca diyabetik hastalarda tüm pıhtılaşma kaskadı bozulur. Doğal bir trombosit antagonisti olan insülinin fonksiyonlarındaki bozulma ve diyabetik hastalarda kan şekeri seviyesindeki dalgalanmalara bağlı inflamatuar yanıtlar, trombositlerin kan damarlarına yapışmasını hızlandırır (Barlovic ve ark., 2011; Duarte ve ark., 2019; Ko ve ark . , 2018 , 2019 ) . Yüksek CRP ile karakterize inflamatuar yanıtlar, hastalarda vasküler hastalığa neden olur (Zhang ve diğerleri, 2014 ). Ayrıca endotelin-1 (endotelin işlev bozukluğundan sorumlu olan ve endotel hücrelerinden, damar duvarı düz kasından salgılanan) (Kalani, 2008)) ve inflamatuar hücreler) diyabetik hastalarda sağlıklı bireylere göre daha fazla salgılanmaktadır (Gogg ve ark., 2009 ; Tablo 2 ). 4.5.1 Klinik çalışmalar


                Tip 2 diyabetli 48 hastada 8 hafta boyunca sesamin (200 mg) tüketimi FBS, HbA1c, TNF-α, bel çevresi, kalça çevresi, vücut adipozite indeksi (BAI), IL-6 miktarını azaltmış ve adiponektin miktarını yükseltmiştir (Mohammad Shahi ve ark., 2017 ) . Ayrıca 300 tip 2 diyabetli hastada susam yağı harmanı (35–40 mL) ve glibenklamid (5 mg) ile 8 haftalık tedavinin FBS, HbA1c, TC, TG, LDL miktarını azalttığı ve HDL'yi arttırdığı gösterilmiştir (Devarajan, Chatterjee, Singh, ve ark., 2016; Devarajan, Chatterjee, Urata, ve ark., 2016 ) .). Ayrıca, 60 gün boyunca susam yağı (35 g) ve glibenklamid (5 mg) tüketimi, tip 2 diyabetli 33 hastada glikoz, HbA1c, TC, LDL ve TG düzeylerini düşürerek ve HDL düzeyini yükselterek antidiyabetik etkileri iyileştirmiştir (Sankar ve ark., 2011 ) . Başka bir çalışmada, tip 2 diyabet hastası 46 hastada susam yağı (900 mL) tüketimi glikozu, HbA1c'yi düşürürken insülini, SOD, CAT ve GPx ekspresyonunu artırır (Aslam ve ark., 2019 ) . Ayrıca 2 hafta boyunca susamlı kahvaltılık (Tahin 30 gr) tüketimi, 41 hastada tip 2 diyabetin neden olduğu inflamasyona karşı hs-CRP düzeyini düşürmüştür (Bahadoran ve ark., 2015) .). 6 hafta boyunca 28 g Ardeh (susam ezmesi) tüketimi, tip 2 diyabetli 41 kişide TG seviyesini, aterojenik plazma indeksi (AIP), TC, LDL seviyesini düşürdü ve HDL seviyesini arttırdı (Mirmiran ve ark., 2013 ) . 4.5.2 In vivo çalışmalar


                6 hafta süreyle susam yağı (0,5 g/kg) ve susam yağı (1,25 g/kg) ile oral tedavi, sıçanlarda STZ'nin neden olduğu diyabetiklere karşı glukoz seviyesini düşürmüş ve HD seviyesini yükseltmiştir (Haidari ve ark., 2016 ) . Ayrıca, susam diyeti (%10 w/w) ile besleme, alloksan-diyabetik sıçanlarda kan şekeri, kolesterol, TG, LDL seviyesini düşürdü ve HDL'yi arttırdı (Akanya ve diğerleri, 2015 ) .

                Benzer şekilde, Nigella sativa (%5 + %10 a/a) ve susam tohumları (%5 + %10 a/a) içeren diyet takviyesi, lenfosit sayısını ve TNF-α, IL4, IL8 üretimini, FBG, TC, TG seviyesini, kan üre nitrojenini ve kreatinin miktarını azalttı ; ancak alloksan kaynaklı diyabetik sıçanlarda SOD, GPx ve CAT ekspresyonunu arttırdı (Ibrahiem, 2016 ). Ek olarak, susam lignanlar ve tokoferollerin tüketimi (%0,25 w/w susam lignin + %0,25 w/w a tocopherol) lipid profilini ve diyabetik (DM) sıçanda ROS üretimini azalttı (Dhar ve diğerleri, 2007 ) . STZ'li tip 1 diyabetin neden olduğu kardiyak fonksiyon bozukluğundan mustarip sıçanlarda, sesamin (100 ve 200 mg/kg) ile oral tedavi, kan basıncını ve kalp atışını azaltmıştır (Thuy ve ark., 2017) .). Ayrıca, susam yağı tüketimi (%6 w/w) kan şekeri, HbA1c, TBARS, lipid hidroperoksitler, glikoz-6-fosfataz ve fruktoz-1, 6-bifosfataz ekspresyonunu azaltmıştır. Bununla birlikte, sıçanlarda STZ'nin neden olduğu diyabete karşı hemoglobin, E vitamini, GSH ve heksokinaz ekspresyonunu arttırmıştır (Ramesh ve ark., 2005 ). Sesamin (10–20 mg/kg, gavaj), STZ ile indüklenen diyabetik sıçanda NOS'deki artış yoluyla vasküler işlev bozukluğunun endotel-sağlam aort halkaları modelinde fenilefrine karşı kasılma yanıtını zayıflattı ve asetilkolin'e gevşeme yanıtını yükseltti (Baluchnejadmojarad ve ark., 2013) .). Ayrıca, fareleri 8 hafta boyunca sesamin (%0,2 w/w) ile beslemek, kan insülini, lipid, süperoksit anyon miktarındaki artışı ve yüksek yağlı diyetle indüklenen NAD (P)H oksidaz ekspresyonunu inhibe etti. Ek olarak, egzersiz kapasitesini ve diyabetik farelerin iskelet kasındaki sitrat sentaz ekspresyonunu arttırmıştır (Takada ve ark., 2015 ).). Ayrıca 2 haftalık sesamin (100 veya 50 mg/kg) ted

                Yorum yap


                • #9
                  Susam yağı, hipertansif sıçanlarda hipokalemiyi düzenleyerek kardiyak hipertrofiyi terapötik olarak iyileştirir

                  Chuan-Teng Liu 1, Srinivasan Periasamy 2, Chih-Ching Chang 2, Fan-E Mo 3, Ming Yi Liu 4
                  üyelikler yıkılmak üyelikler

                  • 1Çevre ve İş Sağlığı Daire Başkanlığı.
                  • 2Çevre ve İş Sağlığı Daire Başkanlığı Çevre ve İş Sağlığı ve Koruyucu Hekimlik Araştırma Merkezi.
                  • 3Hücre Biyolojisi ve Anatomisi Bölümü, Ulusal Cheng Kung Üniversitesi, Tıp Fakültesi, Tainan, Tayvan myliu@mail.ncku.edu.tw femo@mail.ncku.edu.tw.
                  • 4Çevre ve İş Sağlığı Daire Başkanlığı Çevre ve İş Sağlığı ve Koruyucu Hekimlik Araştırma Merkezi myliu@mail.ncku.edu.tw femo@mail.ncku.edu.tw.
                  Soyut

                  Arka plan: Hipokalemi ve hipertansiyon, kardiyovasküler morbidite ve mortalite için prediktif değeri olan preklinik kardiyovasküler durumların yaygın belirtileridir. Kalp yetmezliğinde önemli bir risk faktörü olan kardiyak hipertrofi, uzun süreli hipokalemi ve hipertansiyona bağlanır. Susam yağı besinler açısından zengindir ve güçlü antihipertansif aktivitelere sahiptir.

                  Yöntemler: Susam yağının terapötik potansiyelini, deoksikortikosteron asetatın (DOCA; mineral yağda 15 mg/mL/kg; 5 hafta boyunca haftada iki kez) subkütan olarak enjekte edilmesi ve %1 sodyum klorür içme suyu (DOCA/tuz) ile takviye edilmesiyle oluşturulan hipertansif bir modeli kullanarak, nefrektomi uygulanmamış sıçanlara araştırdık. 4 haftalık DOCA/tuz tedavisinden sonra susam yağı oral sonda ile (7 gün boyunca 0.5 veya 1 mL/kg/gün) uygulandı. Son susam yağı dozundan 24 saat sonra sistolik kan basıncı (SBP) ve diyastolik kan basıncı (DBP), elektrokardiyografi (EKG) ve K(+) ve Mg(2+) seviyeleri değerlendirildi. Histolojik analiz için kalp dokusu toplandı.

                  Bulgular: Susam yağı, DOCA/tuzla indüklenen hipertansif sıçanlarda SBP/DBP ve EKG anormalliklerini etkili bir şekilde azalttı ve serum K(+) ve Mg(2+) seviyelerini arttırırken, K(+)'nın idrarla atılımını sınırlandırdı. Ek olarak, susam yağı kalp kütlesini, sol ventrikülün kalınlığını ve kardiyomiyositlerin çapını azaltarak hipertansif sıçanlarda sol ventrikül hipertrofisinin gerilediğini gösterir.

                  Sonuç: Hipertansif sıçanlarda susam yağının hipokalemiyi düzenleyerek kardiyak hipertrofiyi terapötik olarak iyileştirdiğini gösterdik.

                  Anahtar Kelimeler: kardiyak hipertrofi; deoksikortikosteron asetat; hipertansiyon; hipokalemi; Susam yağı.

                  © 2013 Amerikan Parenteral ve Enteral Beslenme Derneği.

                  Yorum yap


                  • #10
                    Susam Yağı Aromasının Stres Giderici Etkileri ve Aktif Bileşenlerinin Belirlenmesi

                    Hiroaki Takemoto , 1, * Yuki Saito , 2 Kei Misumi , 2 Masaki Nagasaki , 2 ve Yoshinori Masuo 2, *
                    Nurhayat Tabanca, Akademik Editör
                    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
                    1 Moleküler Toksikoloji Bölümü, Eczacılık Bilimleri Fakültesi, Toho Üniversitesi, 2-2-1 Miyama, Funabashi, Chiba 274-8510, Japonya
                    2 Neuroscience Laboratuvarı, Biyoloji Bölümü, Fen Fakültesi, Toho Üniversitesi, 2-2-1 Miyama, Funabashi, Chiba 274-8510, Japonya; pj.u-ohot.ts@s3308125 (YS); pj.u-ohot.ts@m7708125 (KM); pj.u-ohot.ts@n6508125 (MN)
                    * Yazışma: pj.ca.u-ohot.rahp@otomekat.ikaorih (HT); pj.ca.u-ohot.ics.oib@ousam.ironihsoy (YM); Tel.: +81-47-472-2539 (HT); +81-47-472-5257 (YM) İlişkili Veriler

                    Veri Kullanılabilirliği Bildirimi
                    Git: Soyut

                    (1) Susam yağı aroması stres giderici özelliklere sahiptir, ancak etkili kullanımı ve aktif bileşenleri hakkında çok az bilgi vardır. (2) Yöntemler: ICR erkek fareler, 24 saat süreyle suya daldırma stresi altında barındırıldı. Daha sonra stres gruplarına 30, 60 veya 90 dakika boyunca susam yağı veya tipik bir bileşenin kokusu solunmuştur. Susam yağı aromasının fare davranışı üzerindeki etkilerini ve ikili özgüllük fosfataz 1'in ( DUSP1) ifadesini araştırdık.) geni, beyinde aday bir stres işaretleyici gen. (3) Bulgular: Yükseltilmiş bir artı labirent testinde, bir labirentin açık koluna girme oranı ve kalma süresi inhalasyondan 60 dakika sonra maksimuma çıktı, ancak bu etkiler inhalasyondan 90 dakika sonra azaldı. Tek bileşenli olarak 2,5-dimetilpirazin ve 2-metoksi fenol grubunda anksiyolitik etkiler gözlenirken, furfuril merkaptan grubunda etki zayıflamıştır. DUSP1'in ifade seviyelerihipokampus ve striatumda 2,5-dimetilpirazin ve 2-metoksi fenol gruplarında önemli ölçüde azaldı. (4) Sonuçlar: Sakinleştirici etkisi için susam yağının aktif bileşenlerini ve optimal konsantrasyonlarını netleştirdik. Özellikle, 2,5-dimetilpirazin ve 2-metoksi fenol , güçlü anti-stres ajanları olan DUSP1'in ekspresyonunda stres kaynaklı değişiklikleri önemli ölçüde bastırdı . Sonuçlarımız, bu moleküllerin güçlü anti-stres ajanları olabileceğini düşündürmektedir.

                    Anahtar kelimeler: susam yağı aroması, 2,5-dimetilpirazin, 2-metoksi fenol, suya daldırma stresi, antianksiyete, yüksek artı labirent testi, ikili özgüllük fosfataz 1
                    Git: 1. Giriş

                    Merkezi sinir sistemi bozuklukları, nüfusun genel yaşlanma süreci ve yaşam tarzı faktörlerinden dolayı toplum üzerinde büyük bir etkiye sahiptir. Stres, gelişmiş ülkelerde en yaygın psikolojik bozukluklardan biridir ve kaygı, uykusuzluk veya depresyon gibi diğer klinik kaygılara yol açar [ 1]. Uzun süreli stres dönemleri, kronik ve/veya yaşamı tehdit edici hale gelebilecek zararlı etkiler üretir. Bu etkiler, metabolik sendrom, kardiyovasküler hastalık, tip 2 diabetes mellitus, alerjiler ve otoimmün hastalıklar gibi tıbbi durumlardaki rolü ile ilgilidir. Ayrıca, beyin bozuklukları ve işlevleri stresten önemli ölçüde etkilenir. Psikiyatrik patolojileri hızlandırmadaki rolü duygudurum bozuklukları, anksiyete bozuklukları ve travma sonrası stres bozukluğu gibi durumlar için ya önerilmiş ya da kanıtlanmıştır [ 2 ].

                    Benzodiazepinler (BZD) ve seçici serotonin geri alım inhibitörleri (SSRI'ler), sırasıyla anksiyolitik ve antidepresan ilaçlar olarak yüksek oranda reçete edilir. Diazepam, lorazepam veya alprazolam gibi BZD, GABA A reseptörlerine bağlanarak sakinleştirici etkiler üretir ancak aynı zamanda advers ilaç reaksiyonları olarak somnolans, kognitif bozukluk ve ataksiye neden olabilir [ 3 ]. SSRI'lar (örn., fluoksetin, paroksetin ve sitalopram), serotonin taşıyıcısını seçici olarak bloke edebildikleri için antidepresan olarak reçete edilir, ancak yan etkileri arasında cinsel işlev bozukluğu, uyku bozukluğu ve intihar eğilimleri yer alır [4 ] . Her iki ilaç grubu da kullanımları kesildiğinde yoksunluk ve geri tepme etkileri oluşturabilir.

                    Fitoterapi, günlük stresi azaltmak ve merkezi bozuklukları önlemek için son zamanlarda büyük ilgi görmektedir. Özellikle uçucu yağlar, farmakolojik, kozmetik ve beslenme uygulamaları ile doğal ürünler olarak farmasötik bilimlerinde uzun bir geleneğe sahiptir [ 5 ]. Esansiyel yağın aromaterapi şeklinde kullanımı, bazıları kaygı ve stresi azaltmak için ajan olarak kullanılmakla birlikte geniş ölçüde genişletilmiştir [ 6 ]. Örneğin, lavanta esansiyel yağı, Avrupa İlaç Ajansı tarafından stres ve kaygıyı azaltmak için geleneksel olarak bitkisel ilaç olarak kullanılır ve onaylanır [ 1 ].

                    Daha önce, susam yağı aromasının anti-stres etkisini araştırdık [ 7 ]. Son yıllarda stresi azaltıcı etkilerinden dolayı çok çeşitli besinler dikkat çekmektedir. Susam tohumları eski zamanlardan beri Japonya'da popüler bir sağlıklı gıda ürünü olmuştur ve Japonya, ABD ve Avrupa'dan sonra ülke olarak en büyük ikinci miktarı ithal etmektedir [ 8]. Antioksidan etki gösteren susam lignanları susamdaki en popüler etken madde olarak bilinirken, susam tohumları karakteristik bir aromaya sahiptir. Uyku düzensizliği stresi olarak fareler 24 saat suya daldırma stresine maruz bırakıldığında, labirentin açık koluna giriş sayısı azaldı ve yükseltilmiş artı labirent testinde kaygı benzeri davranışlar gözlendi. Bununla birlikte, suya daldırıldıktan sonra 90 dakika boyunca susam yağı aromasının solunması, kaygı benzeri davranışı azaltmıştır.

                    Ayrıca DUSP1 (çift özgüllüklü fosfataz 1) geninin ekspresyonu araştırıldı. DUSP'nin mitojenle aktive olan protein kinaz kaskadının negatif düzenleyicileri olduğu ve nörojenez, farklılaşma ve apoptoz gibi çeşitli nöral fonksiyonları modüle ettiği bilinmektedir. DUSP genleri ayrıca depresyon ve nörolojik bozukluklar gibi zihinsel bozukluklarla ilişkilendirilmiştir [ 9 ]. DUSP1'in beyindeki ekspresyonu suya daldırma stresi ile artmasına rağmen , artan seviye susam yağı aroması ile önemli ölçüde azaltıldı.

                    Kavrulmuş susam tohumlarının eşsiz koku bileşenleri birkaç molekülden oluşur. Xiao Jia ve ark. 2-metil-propanal, 2-metil-bütanal, furaneol, 1-okten-3-on, 4-metil-3-penten-2-on, 1-nonanol, 2-metil-fenol, 2-metoksi fenol, 2-metoksi-4-vinilfenol, 2,5-dimetil dahil olmak üzere en yüksek koku aktivitesi değerlerine sahip on beş uçucu bileşiğin susam yağı aromasının lezzet profiline katkıda bulunan anahtar kokular olarak seçildiğini bildirdi. pirazin, 2-furfuril merkaptan, 2-tiyofenemetantiol, metanetiyol, metiyonal ve dimetil trisülfür [10 ] . Genel olarak, kükürt içeren bileşikler, piroller ve pirazinler, susam yağının karakteristik kokusunda önemli rol oynuyor gibi görünmektedir. Ayrıca bu bileşikler arasında pirazinler susam yağındaki başlıca uçuculardır [ 11] .]. Genellikle kavrulmuş kahve aromasında bulunurlar [ 12 ] ve kahve çekirdeği uçucularının farelerde anksiyolitik ve hipnotik etkileri olduğu bildirilmiştir [ 13 ].

                    Bu çalışmada susam yağı aromasının etkisini daha detaylı inceledik. Koku inhalasyonunun birincil etkileri ve toksik etkileri vardır, bu nedenle inhalasyon uygulamasının optimal süresi belirlendi. Ayrıca susam yağı aromasının aktif bileşenlerini belirledik. Daha önce, susam yağı aromasından pirazinler, metoksifenoller ve kükürt bileşikleri GC-MS analizi ile tespit edildi. 2,5-dimetilpirazin, 2-metoksi fenol ve furfuril merkaptanın anksiyolitik etkisini araştırdık (Şekil 1). Bu çalışmada, susam yağı kokusunun etkin kullanımına yönelik verileri elde etmek için farklı inhalasyon sürelerinde susam yağının anti-stres etkilerinin analizi yapılmış ve susam yağında bulunan tipik bileşiklerin etkileri yükseltilmiş plus-labirent testi ve real-time PCR ile genetik varyasyon analizinden değerlendirilmiştir.
                    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-27-02661-g001.jpg'dir.
                    Şekil 1
                    2,5-dimetilpirazin ( A ), 2-metoksi fenol ( B ) ve furfuril merkaptanın ( C ) kimyasal yapıları .

                    Git: 2. Sonuçlar

                    2.1. Susam Yağı Aromasının Anksiyolitik Etkisi

                    24 saatlik stres yüklemesinden sonra, fareler 0 dakika, 30 dakika, 60 dakika veya 90 dakika boyunca susam yağı aromasını soludu. Yükseltilmiş bir artı labirent testinde, labirentin açık kollarının ve kapalı kolun her birine giriş sayısı ölçüldü ve giriş sayısı başına açık kol giriş sayısının açık ve kapalı kollara oranı, açık kol giriş oranı olarak hesaplandı (şekil 2A).şekil 2B, açık kolda kalma süresini gösterir. 0 dk grubunda açık kol giriş oranının ortalama değeri %23,6 iken 30 dk grubunda %65,8 ve 60 dk grubunda %90,2 idi (şekil 2A). Açık kol girişi artışının oranı inhalasyon süresine bağlıydı. Ancak 90 dk grup değeri %62.8 olup, anksiyolitik etkide bir azalmaya işaret etmektedir. Açık kolda kalma süresinin sonucu, açık kol giriş oranına benzerdi. 0 dk grubunda açık kolda kalma süresi ortalama değeri 128,8 sn iken 30 dk grubunda 312,7 sn ve 60 dk grubunda 391,0 sn (şekil 2B). Ancak 90 dk grubundaki değer 253.3 s idi. Bu sonuçlar, susam yağı kokusunun kaygı azaltıcı bir etkiye sahip olabileceğini düşündürmektedir. Önemli bir stres azaltıcı etkinin inhalasyon uygulamasından 30 dakika sonra ortaya çıktığı ve en büyük etkinin inhalasyon uygulamasından 60 dakika sonra gözlendiği bulundu.
                    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-27-02661-g002.jpg'dir.
                    şekil 2
                    Yükseltilmiş artı labirent testi. ( A ) Açık kol giriş oranı (%), ( B ) açık kolda kalma süresi (sn). Sonuçlar ortalama ± SEM'yi temsil eder (n = 6). * p < 0.05, ** p < 0.01 (İki yönlü ANOVA, ardından Tukey testi veya Student t testi). 2.2. Susam Yağı Aromasının Bileşenlerinin Anksiyolitik Etkisi

                    24 saatlik stres yüklemesinden sonra fareler, 30 dakika boyunca susam yağı aromasının bir bileşeni olan 2,5-dimetilpirazin, 2-metoksi fenol veya furfuril merkaptan soludu. Açık kol giriş oranı ve açık kolda kalma süresi şekilde gösterilmiştir.Figür 3. Açık kol giriş oranı susam yağı grubunun %65,8, 2,5-dimetilpirazin grubunun %83,3 ve 2-metoksi fenol grubunun %88,2 idi. Ancak furfuril merkaptanın etkisi zayıflamış ve açık kol giriş oranı sadece %22,6 olmuştur (Figür 3A). Benzer şekilde 2,5-dimetilpirazin (479,7 sn) ve 2-metoksi fenol gruplarının (519,4 sn) açık kolda kalma süresi susam yağından (312,7 sn), furfuril merkaptan grubunun açık kolda kalma süresi (118,3 sn) susam yağından (312,7 sn) anlamlı olarak daha kısaydı (Figür 3B). Bu sonuçlar, 2,5-dimetilpirazin ve 2-metoksi fenolün susam yağının stres giderici etkisinde yer alan aktif bileşenler olduğunu düşündürmektedir.
                    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-27-02661-g003.jpg'dir.
                    Figür 3
                    Yükseltilmiş artı labirent testi. ( A ): açık kol giriş oranı (%), ( B ): açık kolda kalma süresi (sn). Sonuçlar ortalama ± SEM'yi temsil eder (n = 6). * p < 0.05, ** p < 0.01 (İki yönlü ANOVA, ardından Tukey testi veya Student t testi). 2.3. Susam Yağı Aromasının Solunmasından Sonra DUSP1 İfadesi

                    24 saatlik stres yüklemesinden sonra, fareler 0 dakika, 30 dakika, 60 dakika veya 90 dakika boyunca susam yağı aromasını soludu. DUSP1 geninin ekspresyon seviyeleri, inhalasyon uygulamasının sonunda ölçüldü (Şekil 4). DUSP1'in hipokampustaki ekspresyon seviyesi, 30 dakikalık inhalasyon grubunda önemli ölçüde arttı ( p < 0.05, iki yönlü ANOVA). Ancak 60 ve 90 dakikalık inhalasyon gruplarında ifade seviyeleri azaldı (Şekil 4A). Öte yandan striatumda 30 dk ve 60 dk inhalasyondan sonra ekspresyon düzeyi anlamlı olarak azaldı ve bu eğilim 90 dk inhalasyon grubunda da gözlendi (Şekil 4B).
                    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı moleküller-27-02661-g004.jpg'dir.
                    Şekil 4
                    DUSP1'in hipokampusta ( A ) ve striatumda ( B ) ifade düzeyi . Sonuçlar ortalama ± SEM gösterir (kontrol/tuzlu su, stres/tuzlu su, kontrol/susam, stres/susam, n = 6). * p < 0.05 (iki yönlü ANOVA, ardından Tukey testi veya Student t testi). 2.4. Susam Yağı Aroma Bileşenlerinin Solunmasından Sonra DUSP1 İfadesi

                    24 saatlik stres yüklemesinden sonra, fareler 2,5-dimetilpirazin, 2-metoksi fenol veya furfuril merkaptanı 90 dakika soludu (Şekil 5). Hem striatum hem de hipokampustaki ekspresyon seviyesi, 2,5-dimetilpirazin ve 2-metoksi fenol gruplarında önemli ölçüde azaldı ( p < 0.05, iki yönlü ANOVA). Furfuril merkaptan'ın etkisi diğer iki bileşiğe göre daha düşüktü ve ekspresyon seviyesi düşme eğilimindeydi; ancak, önemli bir fark yoktu.
                    Resim, çizim vb. tutan harici bir dosya. Nesne adı moleküller-27-02661-g005.jpg'dir.
                    Şekil 5
                    DUSP1'in hipokampusta ( A ) ve striatumda ( B ) ifade düzeyi . Sonuçlar ortalama ± SEM gösterir (kontrol/tuzlu su, stres/tuzlu su, kontrol/susam, stres/susam, n = 6). * p < 0.05 (iki yönlü ANOVA, ardından Tukey testi veya Student t testi).

                    Git: 3. Tartışma

                    Susam yağı aromasının anti-stres etkisine sahip olduğunu daha önce bildirmiştik [ 7 ]. Bu çalışmada, susam yağı aromasının işlevselliğinin ayrıntılı bir analizini yaptık. İlk olarak, inhalasyon süresinin anti-stres etkisi üzerindeki etkisi analiz edildi. Anti-stresin davranış üzerindeki etkisini değerlendirmek için yükseltilmiş artı labirent testi yaptık. Suya daldırma stresinin açık kola penetrasyon oranını ve açık kollarda kalma süresini azalttığı gösterilmiştir [ 7 ]. Susam yağı aromasının anti-stres etkisi inhalasyondan 30 dakika sonra ortaya çıktı ve etki inhalasyondan 60 dakika sonra daha da güçlüydü (şekil 2). Öte yandan, anti-stres etkisi 90 dakikalık inhalasyondan sonra zayıfladı. Solunan uçucu bileşenlerin, koku alma sinirleri ve kan dolaşımı yoluyla merkezi sinir sistemi üzerinde etkili olduğu bilinmektedir [ 14 ]. Susam yağında bulunan etken maddenin kandaki artan düzeylerinin 90 dakika inhalasyondan sonra toksisiteye neden olabileceği öne sürüldü.

                    Lavanta yağı esas olarak linalool ve linalil asetat içerir ve linaloolün insanlar üzerinde düşük dozlarda buhar inhalasyonu yoluyla sedatif etkiye sahip olduğu bildirilmiştir [ 15 ]. Ancak sinir toksisitesine de sahiptir ve memeliler için LC50 2740 mg/m3'tür [ 16 ] . Daha önce koku bileşenlerinin kan konsantrasyonu ile sedatif etkinin başlangıcı arasındaki ilişkiyi intravenöz uygulama testi ile araştırdık. Valeriana officinalis'in bir bileşeni olan Valerena-4,7(11)-dienyağ, 10, 100 ve 1000 µg/kg dozlarında intravenöz olarak uygulandı ve açık alan testleri yapıldı. Sedatif etkiler 100 ug/kg grubunda 10 ug/kg grubuna göre daha fazlaydı; ancak 1000 µg/kg ile tedavi, doz aşımını düşündürecek şekilde azalan bir etkiye neden olmuştur. Susam yağı aromasının uzun süre solunmasının anti-stres etkilerini zayıflattığı öne sürüldü.

                    Daha sonra hipokampus ve striatumdaki DUSP1 gen ifadelerini inceledik . Hipokampus stres düzenlemede önemli bir rol oynar. Hipotalamik-hipofiz-adrenal eksen aktivitesi üzerinde inhibe edici kontrol uygular ve ayrıca diğer limbik prefrontal bölgelerle yaygın bağlantıları aracılığıyla bilişsel ve duygusal işlemede daha geniş bir şekilde yer alır [17 ] . Striatum klasik olarak motor fonksiyonda kilit bir rol oynuyor olarak tanımlanır ve motor alışkanlıkların yürütülmesini ayarlamak için önemli olan bazal ganglionların bir parçasıdır. Bu nedenle, motor otomatisitedeki eksiklikler, Parkinson hastalığı gibi bazal ganglionlarla ilişkili hastalıkların bir özelliğidir.

                    Ayrıca, depresyonun ana semptomlarından biri olan kaygı, striatum tarafından düzenlenebilir. Anksiyetenin altında yatan striatumla ilişkili devre mekanizmalarından biri olarak, striatal-prefrontal yol devreye girer ve daha az bağlantılı hale gelir, kortiko-striatal bağlantılar da bozulur ve anksiyete ifade edilir [18 ] . DUSP1'in ekspresyon seviyesinin kronik stres yaşayan sıçan beyninde arttığı [ 19 ] ve antidepresanlarla tedavi ile azaldığı [ 20 ] bilinmektedir . DUSP1 geni, depresyon ve diğer duygudurum bozukluklarının tedavisi için umut verici yeni bir ilaç hedefinin temsilcisi olabilir. Bu çalışma, susam yağı kokusunun, susam yağının ekspresyon seviyesini önemli ölçüde engellediğini göstermiştir.DUSP1 striatumda. Hipokampustaki seviye ise 30 dakikalık inhalasyon grubunda ani olarak yükselmiştir (Şekil 4).

                    Bu çalışmada, susam yağının tipik aromatik bileşenlerinin anti-stres etkilerini inhalasyon uygulamasıyla daha fazla analiz ettik. 2,5-Dimetilpirazin ve 2-metoksi fenol, susam yağından daha güçlü anti-stres etkisi gösterirken, furfuril merkaptanın hiçbir etkisi olmadı (Figür 3). Pirazinler ve fenoller de yaygın olarak kahve ve çayın kavrulmuş aromasında bulunur. Bu bileşiklerin stres azaltıcı bir etkiye sahip olduğu ileri sürülmüştür [ 21 ] 2,5-Dimetilpirazin 2-metoksi fenol, susam yağında bulunan kavrulmuş aroma, stres azaltıcı etkilerinde yer alan aktif bir bileşen gibi görünmektedir. Alkilpirazin türevlerinin fare beyninde pentobarbital kaynaklı uyku süresi, pikrotoksin kaynaklı konvülsiyon ve γ-aminobutirik asit seviyeleri üzerindeki etkisi bildirilmiştir [ 21 ]. Bu sonuçlar, alkilpirazin türevlerinin beyindeki GABAerjik sistemi güçlendirebileceğini düşündürmektedir.

                    Öte yandan, furfuril merkaptan gibi kükürt bileşikleri de kavrulmuş kahve, buğday ekmeği ve patlamış mısırda karakteristik aroma bileşeni olarak tanımlanmış ve bu bileşiklerin susam tohumlarının lezzetine önemli katkılarda bulunduğu doğrulanmıştır [22 ] . Furfuril merkaptan yükseltilmiş artı labirent testinde anti-stres etkisi göstermedi ve DUSP1'in ekspresyon seviyesi azalma eğilimi gösterdi ancak kontrolden farklı değildi. Ağız kokusu gibi hoş olmayan kokulu gazlar, hidrojen sülfit, metil merkaptan ve dimetil sülfür gibi uçucu kükürt bileşiklerinden kaynaklanır [ 23] .]. Furfuril merkaptan anti-stres etkileri de sergileyebilir, ancak bu deneyde kullanılan konsantrasyon hem hoş hem de hoş olmayan etkilerin ortaya çıktığı sınırdaki konsantrasyon olarak kabul edilir. Bu nedenle, gelecekte düşük konsantrasyonlarda furfuril merkaptanın etkisinin doğrulanması gerekmektedir. Hipokampustaki DUSP1, susam yağı uygulamasından 30 dakika sonra yükseldi, ancak bunun nedeni hoş olmayan bir koku olabilir. Bununla birlikte, DUSP1 seviyesi , bu çalışmada bulunan bileşiklerin anti-stres etkilerini yansıtabilecek şekilde, susam yağı uygulamasından 60 dakika sonra düşmüştür. Susam yağının anti-stres etkileri 60 dakikalık inhalasyon ile maksimize edilebilir.

                    Susam yağının güvenliği lignanlar için test edilmiştir [ 24 ]. Susam lignanlarının (sesamin ve episesamin) çoklu oral dozlarının farmakokinetiğini ve güvenliğini araştırmak için 48 sağlıklı denekte tek kör, plasebo kontrollü, paralel grup ve çoklu oral doz çalışması yapılmıştır. Bu çalışmada hiçbir ciddi yan etki gözlenmedi. Farmakokinetik çalışma sonuçları, çoklu 50 mg susam lignan dozlarının ardından herhangi bir birikimin gözlenmediğini göstermektedir. Bu nedenle, özellikle anti-stres etkileri nedeniyle kokuların kullanımı güvenli kabul edilir.

                    Son zamanlarda aromaterapi, özellikle stresin neden olduğu psikosomatik hastalıklar için alternatif bir tıp olarak büyük ilgi görmektedir. Susam yağı kokusunun etkilerini inceledik ve sakinleştirici etkisi olan susam yağının teneffüs edilmesi için en uygun zamanı netleştirdik. Ayrıca, susam kokusu bileşenlerinin, 2,5-dimetilpirazin ve 2-metoksi fenolün, striatum ve hipokampusta bir aday stres işaretleyici gen olan DUSP1'in ifadesinde stres kaynaklı değişiklikleri önemli ölçüde bastırdığını bulduk .

                    Git: 4. Malzemeler ve Yöntemler

                    4.1. Malzemeler

                    Bu çalışmada kullanılan aromatik susam yağı Kuki Sangyo Co., Ltd.'den (Mie, Japonya) satın alınmıştır. Bu yağ, Guatemala'dan beyaz susam tohumlarının preslenmesi ve çıkarılması ve ardından bir soğutma işlemi ile üretildi. 2,5-Dimetilpirazin (saflık > %98, GC), 2-metoksi fenol (saflık > %98, GC) ve furfuril merkaptan (saflık > %98, GC), Tokyo Chemical Industry Co., Ltd.'den (Tokyo, Japonya) satın alınmıştır. 4.2. Hayvan Deneyi

                    Bu çalışma, Toho Üniversitesi Hayvan Deneyi Komitesi'nin hayvan deneyi işleme hükümlerine göre gerçekleştirilmiştir. Komite, hayvan deneyi tasarım planını onayladı. Clea Japan'dan (Tokyo, Japonya) satın alınan 5 haftalık ICR erkek fareler, kafes başına üç hayvan olacak şekilde akrilik bir kafese yerleştirildi ve 24 ± 2 °C'de 12 saatlik aydınlık/karanlık döngüsü (ışık periyodu 08:00–20:00) altında tutuldu. Yiyecek ve suya ad libitum olarak izin verildi. Yetiştirme ortamına bir haftadan fazla uyum sağladıktan sonra, fareler rastgele her grupta dört fare olacak şekilde gruplara ayrıldı. Tüm fare grupları, farenin uzvunun daldırıldığı ölçüde (yaklaşık 1 cm su derinliği) suyla bir kafeste 24 saat süreyle yetiştirildi, bu sayede fareler, indüklenen rahatsızlık ve uykusuzluktan dolayı bir stres tepkisi yaşadılar [25] .]. İnhalasyon, 24 saatlik stres yüklemesinden hemen sonra, saat 10:30'da başladı. Koku, içine 50 μL susam yağı veya 5 μL 2,5-dimetilpirazin, 2-metoksi fenol veya furfuril merkaptan emdirilmiş bir filtre kağıdı parçasının yapıştırıldığı bir cam kutuya yerleştirildi ve fareler 30, 60 veya 90 dakika inhale edildi. Kontrol olarak fizyolojik salin kullanıldı. İnhalasyon uygulaması tamamlandıktan sonra davranış testleri ve diseksiyonlar aşağıdaki gibi yapıldı. Bu çalışma, Toho Üniversitesi Hayvan Deneyi Komitesi tarafından hayvan deneyi işleme hükümlerine göre gerçekleştirilmiştir. Hayvan deneyi tasarım planı komite tarafından onaylanmıştır (onay numarası: 21-31-476, tarih: 1 Nisan 2021). 4.3. Davranış Analizi

                    Anksiyete benzeri davranışın değerlendirilmesi, aromanın inhalasyonu tamamlandıktan hemen sonra 10 dakika boyunca yükseltilmiş artı labirent testi ile yapıldı. Labirent 30 cm kol uzunluğu, 5 cm kol genişliği, 60 cm yerden yükseklik ve 20 cm kapalı kol duvar yüksekliğinden oluşmaktadır. Fareyi labirentin ortasına koyduktan hemen sonra hayvanların davranışları video kamera ile kayıt altına alındı. Açık kola girme sayısı ve kalma süresi ve kapalı kola girme sayısı ve kalma süresi, davranış izleme yazılımı ANY-maze (Muromachi Kikai, Tokyo, Japonya) kullanılarak otomatik olarak kaydedildi [7 ] . 4.4. Toplam RNA Ekstraksiyonu

                    Farelerin başları kesildi ve tüm beyinleri toplandı. Beynin tamamı buz üzerinde disseke edildi ve striatum ve hipokampus örneklendi. Beyin dokusu hemen sıvı nitrojen içinde donduruldu ve donmuş doku sıvı nitrojen içinde toz haline getirilerek toz haline getirildi. Her beyin dokusu numunesine bir mililitre Qiazol (Qiagen, Hilden, Almanya) ilave edildi ve numune tamamen eriyene kadar karıştırıldı. Toplam RNA, üreticinin protokollerine göre RNeasy Mini Kit (Qiagen) ve RNase-Free DNase seti (Qiagen) ile ekstre edildi. RNA, RNaz içermeyen suda çözündürüldü ve elde edilen toplam RNA'nın konsantrasyonu ve saflığı, NanoDrop (Thermo Fisher Scientific, Waltham, MA, ABD) kullanılarak ölçüldü. Düşük saflığa sahip numuneler, Ethachinmate (Nippon Jean, Tokyo, Japonya) ile etanolle çökeltildi.7 ]. 4.5. cDNA Sentezi

                    ReverTra Ace® qPCR RT Master Mix (Toyobo, Osaka, Japonya) kullanılarak cDNA'yı sentezlemek için elde edilen RNA'dan ters transkripsiyon gerçekleştirildi . İlk olarak numune miktarı, her numunenin RNA konsantrasyonu 10 µL'de 1 pg/μL ila 1 μg/μL olacak şekilde hesaplandı. Her örneğin 2 μL'sine toplam 6 μL nükleaz içermeyen su ilave edildi ve 2 μL 2 × RT Ana Karışım (ReverTra Ace ® qPCR RT Ana Karışım, Toyobo) eklendi. cDNA, GeneAmp PCR System 9700 (Applied Biosystems, Thermo Fisher Scientific) kullanılarak ters transkripsiyonla sentezlendi. cDNA sentezi için koşullar 37 °C'de 15 dakika, 50 °C'de 5 dakika ve 98 °C'de 5 dakika idi. Sentezlenen cDNA -20 °C'de [ 7 ] saklandı . 4.6. Gerçek Zamanlı Ters Transkripsiyon-Polimeraz Zincir Reaksiyonu (Gerçek Zamanlı RT-PCR)

                    Gerçek zamanlı RT-PCR için TB Green Premix Ex Taq II (Takara Bio, Shiga, Japonya) kullandık. cDNA örneğinin her 2 μL'si için 1,6 μL primer (İleri ve Geri, her biri 0,8 μL) (tablo 1) (Takara Bio) ilave edildi ve 8,5 µL RNaz içermeyen su, 12,5 µL TB Green Premix Ex Taq II ve 0,4 µL Rox Reference Dye ilave edilerek toplam 25 µL elde edildi. cDNA'nın ekspresyon seviyesi, bir Applied Biosystems® 7500 gerçek zamanlı PCR sistemi (Thermo Fisher Scientific) kullanılarak ölçüldü . Tutma aşaması, 2 dakika süreyle 50°C'de ve 10 dakika süreyle 95°C'deydi. 40 döngü için döngü aşaması, 15 s için 95 °C'de ve 1 dakika için 60 °C'deydi. Erime eğrisi aşaması, 95 °C'de 15 saniye, 60 °C'de 1 dakika, 95 °C'de 30 saniye ve 60 °C'de 15 saniyeydi. Her numunenin gen ekspresyon seviyesinin analizi, bir temizlik geni olan gliseraldehit 3-fosfat dehidrojenazın ( GAPDH ) ekspresyon seviyesi ile karşılaştırılarak gerçekleştirildi . DUSP1'in ifade seviyeleriGAPDH'nin ifade düzeyine bölünen düzeltme değerleri olarak hesaplandı . Bu çalışmada kullanılan her bir genin primer sekansı, önceki rapordaki ile aynıydı [ 7 ]. tablo 1

                    Mevcut çalışmada ölçülen her bir genin primer dizisi.
                    GAPDH Forvet: 5′-GGGTCCCAGCTAGGTTCATCA-3'
                    Ters: 5'-GTTCACACCACCTTCACCATT-3'
                    DUSP1 İleri: 5'-CGCAGTGCCTGTTGTTGGA-3'
                    Ters: 5′-TGAAGGCCACGTTCACTGAG-3'
                    Ayrı bir pencerede aç 4.7. İstatistiksel analiz

                    Sonuçlar ortalama ± SEM olarak ifade edildi. Dört grup arasında anlamlılık için ANOVA analizi yapıldı ve Tukey yöntemi kullanılarak ileri analiz yapıldı. Bazı durumlarda sonuçlar, iki grup arasındaki anlamlı farkı belirlemek için bir Student t testi ile analiz edildi. p < 0,05 istatistiksel olarak anlamlı kabul edildi. Analizler BellCurve for Excel (Social Survey Research Information Co., Ltd. Tokyo, Japonya) ile yapılmıştır.

                    Git: 5. Sonuçlar

                    Susam yağı aromasının ve bununla ilişkili tipik içerik maddelerinin davranış ve stresle ilgili biyobelirteçler üzerindeki etkisi araştırıldı. Yükseltilmiş bir artı labirent testinde, susam yağı aromasının anksiyolitik etkisi 60 dakikalık inhalasyondan sonra maksimuma çıktı, ancak inhalasyondan 90 dakika sonra etki azaldı. Tek bileşenli olarak 2,5-dimetilpirazin ve 2-metoksi fenol gruplarında anksiyolitik etkiler gözlenirken, furfuril merkaptan grubunda etki zayıflamıştır. DUSP1'in ifadesi ayrıca yükseltilmiş artı labirent testine benzer sonuçlar gösterdi. Susam yağının aktif bileşenlerini ve yatıştırıcı etkileri için en uygun konsantrasyonları netleştirdik. 2,5-Dimetilpirazin ve 2-metoksi fenol, DUSP1'in ifadesindeki stres kaynaklı değişiklikleri önemli ölçüde bastırdı., striatum ve hipokampusta bir aday stres işaretleyici geni.

                    Git: teşekkürler

                    Yazarlar, Kazuo Koike (Toho Üniversitesi) ve Tadaaki Sato'ya (Uluslararası Sağlık ve Refah Üniversitesi) minnettardır. Bu araştırma, Kewpie Corporation'ın Araştırma ve Geliştirme departmanı ile işbirliği içinde yürütülmüştür.

                    Git: Yazar Katkıları

                    HT ve YM deneyleri tasarladı ve verileri analiz etti; HT, YS, KM ve MN deneylerini gerçekleştirdi; YM projeyi kavramsallaştırdı ve denetledi; HT ve YM taslağı birlikte yazdı. Tüm yazarlar makalenin yayınlanan versiyonunu okudu ve kabul etti.

                    Git: Finansman

                    Bu araştırma, Japonya Bilim ve Teknoloji Ajansı'nın (JST) Genç Bilim İnsanları İçin Yardım Hibesi (19K16400) tarafından desteklenmiştir, Japonya HT'ye bağışlanmıştır.

                    Git: Kurumsal İnceleme Kurulu Beyanı

                    Bu çalışma, Toho Üniversitesi Hayvan Deneyi Komitesi tarafından hayvan deneyi işleme hükümlerine göre gerçekleştirilmiştir. Hayvan deneyi tasarım planı komite tarafından onaylanmıştır (onay numarası: 21-31-476, tarih: 1 Nisan 2021).

                    Git: Bilgilendirilmiş Onam Beyanı

                    Uygulanamaz.

                    Git: Veri Kullanılabilirliği Bildirimi

                    Bu çalışmada sunulan veriler, ilgili yazardan istek üzerine temin edilebilir.

                    Git: Çıkar çatışmaları

                    Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

                    Git: Dipnotlar


                    Yayıncının Notu: MDPI, yayınlanan haritalardaki ve kurumsal bağlantılardaki yetki iddiaları konusunda tarafsız kalır.


                    Git: Referanslar

                    1. López V., Nielsen B., Solas M., Ramírez MJ, Jäger AK Lavanta ( Lavandula angustifolia ) Uçucu Yağının Merkezi Sinir Sistemi Hedeflerindeki Farmakolojik Mekanizmalarını Keşfetmek. Ön. Eczane. 2017; 19 :280. doi: 10.3389/fphar.2017.00280. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    2. Moreno-Rius J. Stres altındaki beyincik. Ön. Nöroendokrinol. 2019; 54 :100774. doi: 10.1016/j.yfrne.2019.100774. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    3. Atkin T., Comai S., Gobbi G. Benzodiazepinlerin Ötesinde Uykusuzluk İçin İlaçlar: Farmakoloji, Klinik Uygulamalar ve Keşif. Eczane. Rev. 2018; 70 :197–245. doi: 10.1124/pr.117.014381. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    4. Papakostas GI Modern antidepresanların tolere edilebilirliği. J. Clin. Psikiyatri. 2008; 69 :8–13. [ Google Akademik ]
                    5. Bakkali F., Averbeck S., Averbeck D., Waomar M. Uçucu yağların biyolojik etkileri—Bir inceleme. Gıda Kimyası Toksikol. 2007; 46 :446–475. doi: 10.1016/j.fct.2007.09.106. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    6. Setzer WN Uçucu yağlar ve anksiyolitik aromaterapi. Nat. Üretim komün. 2009; 4 :1305–1316. doi: 10.1177/1934578X0900400928. [ CrossRef ] [ Google Akademik ]
                    7. Takemoto H., Take C., Kojima K., Kuga Y., Hamada T., Yasugi T., Kato N., Koike K., Masuo Y. Suya Daldırma Stresine Maruz Kaldıktan Sonra Susam Yağı Aromasının Fareler Üzerindeki Etkileri: Beyinde Davranış ve Gen İfadesinin Analizi. moleküller. 2020; 24 :5915. doi: 10.3390/moleküller25245915. [ CrossRef ] [ Google Akademik ]
                    8. Morris JB Gıda, susam genetik kaynaklarının endüstriyel, nutrasötik ve farmasötik kullanımları. İçinde: Janick J., Whipkey A., editörler. Yeni Mahsullerdeki Eğilimler ve Yeni Kullanımlar. KÜL Basın; İskenderiye, VA, ABD: 2002. sayfa 153–156. [ Google Akademik ]
                    9. An N., Bassil K., Al Jowf GI, Steinbusch HWM, Rothermel M., de Nijs L., Rutten BPF Mental ve nörolojik bozukluklarda dual-spesifik fosfatazlar. Prog. Nörobiyol. 2021; 198 :101906. [ PubMed ] [ Google Akademik ]
                    10. Jia X., Zhou Q., Wang J., Liu C., Huang F., Huang Y. E-burun ve HS-SPME-GC×GC-TOF/MS kullanılarak mikrodalga fırınlanmış tohumlardan elde edilen susam yağındaki temel aroma-aktif bileşiklerin tanımlanması. J. Gıda Biyokimyası. 2019; 43 :e12786. [ PubMed ] [ Google Akademik ]
                    11. Park MH, Jeong MK, Yeo J., Son HJ, Lim CL, Hong EJ, Noh BS, Lee J. Farklı kavurma koşullarıyla hazırlanan susam yağlarının uçucularını ayırt etmek için katı faz mikro özütleme (SPME) ve elektronik burun tekniklerinin uygulanması. J. Gıda Bilimi 2011; 76 :80–88. [ PubMed ] [ Google Akademik ]
                    12. Chin ST, Eyres GT, Marriott PJ Gaz kromatografisi-olfaktometri ve kapsamlı iki boyutlu gaz kromatografisi kullanılarak şarap ve demlenmiş kahvedeki güçlü kokuların tanımlanması. J. Kromatr. A.2011 ; 1218 :7487–7498. doi: 10.1016/j.chroma.2011.06.039. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    13. Hayashi Y., Sogabe S., Hattori Y., Tanaka J. Kavrulmuş kahve çekirdeği uçucu bileşiklerinin farelerde anksiyolitik ve hipnotik etkileri. Nörobilim. Letonya 2012; 531 :166–169. doi: 10.1016/j.neulet.2012.10.044. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    14. Satou T., Matsuura M., Takahashi M., Umezu T., Hayashi S., Sadamoto K., Koike K. Abies sachalinensis'ten ekstrakte edilen uçucu yağın anksiyolitik benzeri etkisi . Lezzet Kokusu J.2011 ; 26 :416–420. doi: 10.1002/ffj.2075. [ CrossRef ] [ Google Akademik ]
                    15. Sugawara Y., Hara C., Tamura K., Fujii T., Nakamura T., Aoki T. Linalool esansiyel yağının inhalasyonunun insanlar üzerindeki sedatif etkisi: Optik olarak aktif linalooller kullanılarak duyusal değerlendirme ve fizyolojik ölçümler. Anal. Chim. Açta. 1998; 365 :293–299. doi: 10.1016/S0003-2670(97)00639-9. [ CrossRef ] [ Google Akademik ]
                    16. Takemoto H., Ito M., Shiraki T., Yagura T., Honda G. Agarwood yağı ve sümbül ekstresinin buhar inhalasyonunun sedatif etkileri ve bunların aktif bileşenlerinin tanımlanması. J. Nat. Med. 2008; 62 :41–46. doi: 10.1007/s11418-007-0177-0. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    17. Gujral S., Aizenstein H., Reynolds CF, Butters MA, Erickson KI Egzersizin depresyon üzerindeki etkileri: Olası nöral mekanizmalar. General Hosp. Psikiyatri. 2017; 49 :2–10. doi: 10.1016/j.genhosppsych.2017.04.012. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    18. Miyanishi H., Nitta A. BDNF'nin Depresyon Patogenezindeki Rolü ve Antidepresan Olarak Potansiyel Bir Hedef: Dorsal Striatum'daki Stres Duyarlılığı “Shati/Nat8l-BDNF Sistemi” Modülatörü. İlaçlar. 2021; 14 :889. doi: 10.3390/ph14090889. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    19. Iio W., Matsukawa N., Tsukahara T., Kohari D., Toyoda A. Kronik sosyal yenilgi stresinin MAP kinaz kademesi üzerindeki etkileri. Nörobilim. Letonya 2011; 504 :281–284. doi: 10.1016/j.neulet.2011.09.047. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    20. Déry N., Goldstein A., Becker S. Çoklu zaman ölçeklerinde yetişkin hipokampal nörojenez için bir rol: İnsanlarda yakın ve uzak hafıza üzerine bir çalışma. Davranış Nörobilim. 2015; 129 :435–449. doi: 10.1037/bne0000073. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    21. Yamada K., Watanabe Y., Aoyagi Y., Ohta A. Fare beyninde alkilpirazin türevlerinin pentobarbital kaynaklı uyku süresi, pikrotoksin kaynaklı konvülsiyon ve gama-aminobütirik asit (GABA) seviyeleri üzerindeki etkisi. Biol. eczane Boğa. 2001; 24 :1068–1071. doi: 10.1248/bpb.24.1068. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    22. Sha S., Chen S., Qian M., Wang C., Xu Y. Çin Kavrulmuş Susam Benzeri Tat Tipi Likördeki Tipik Güçlü Koku Maddelerinin Headspace Katı Faz Mikro Ekstraksiyon-Aroma Özü Seyreltme Analizi ile Kükürt İçeren Koku Maddelerine Özel Vurgu ile Karakterizasyonu. J. Agric. Gıda Kimyası 2017; 65 :123–131. doi: 10.1021/acs.jafc.6b04242. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    23. Mitsubayashi K., Minamide T., Otsuka K., Kudo H., Saito H. Ağız kokusunda metil merkaptan için optik bio-sniffer. Anal. Chim. Açta. 2006; 28 :75–80. doi: 10.1016/j.aca.2006.01.062. [ CrossRef ] [ Google Akademik ]
                    24. Tomimori N., Tanaka Y., Kitagawa Y., Fujii W., Sakakibara Y., Shibata H. Sağlıklı deneklerde susam lignanlar, sesamin ve episesamin'in farmakokinetiği ve güvenliği. Biyofarm. İlaç. İmha 2013; 34 :462–473. doi: 10.1002/bdd.1862. [ PubMed ] [ CrossRef ] [ Google Scholar ]
                    25. Seo H.-S., Hirano M., Shibato J., Rakwal R., Hwang IK, Masuo Y. Uyku Yoksunluğundan Strese Giren Fare Beyni Üzerinde Kahve Çekirdeği Aromasının Etkileri: Seçilmiş Bir Transkript ve 2D Jel Bazlı Proteom Analizi. J. Agric. Gıda Kimyası 2008; 56 :4665–4673. doi: 10.1021/jf8001137. [ PubMed ] [ CrossRef ] [ Google Scholar ]

                    Yorum yap

                    Hazırlanıyor...
                    X