Duyuru

Collapse
No announcement yet.

Nar Cekirdegi Yagi

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Nar Cekirdegi Yagi


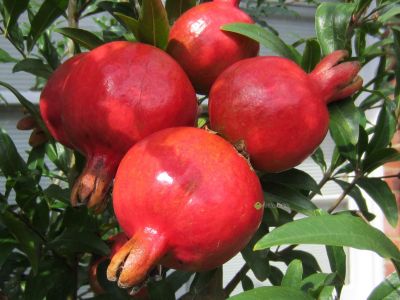
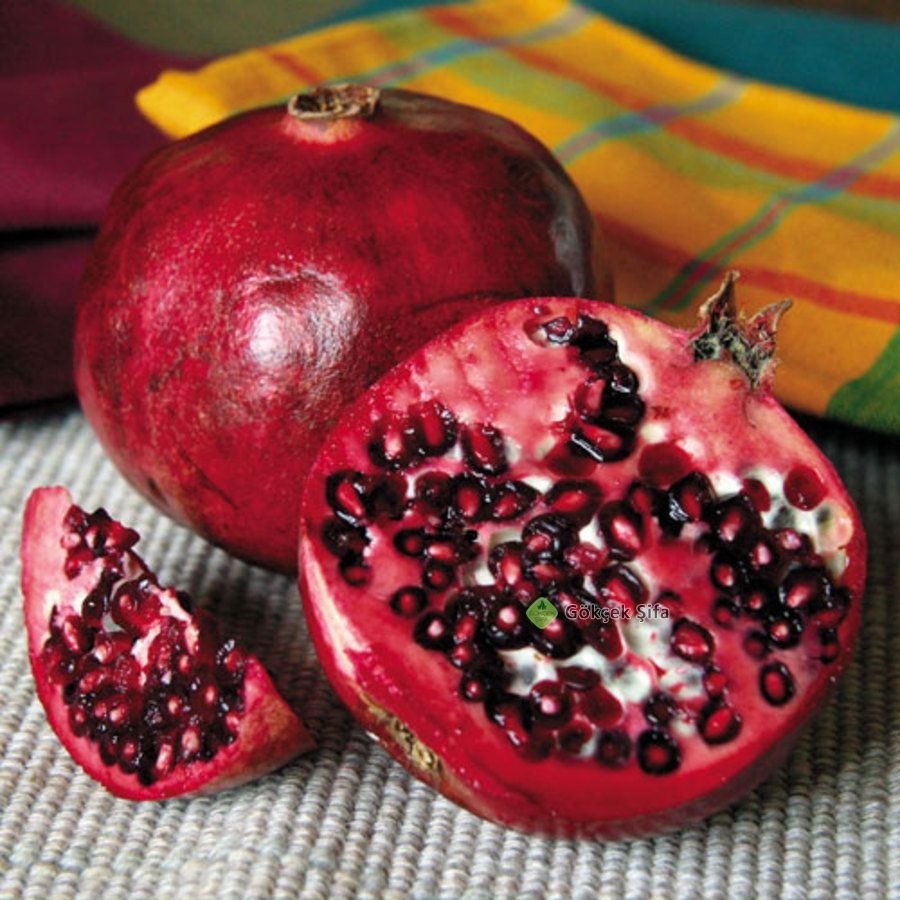
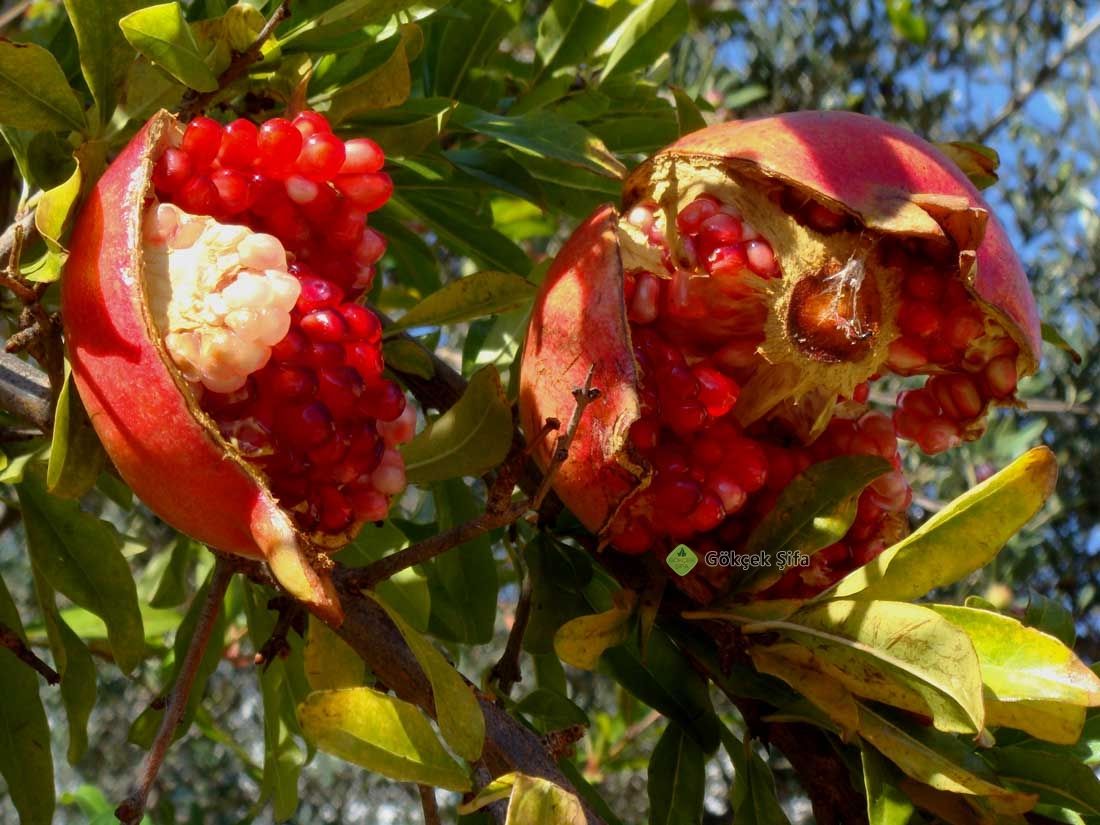
    NAR Ağaç | 3-6m | 6-9 Aylar | Ça,Şu | Meyvesi ve Kabuğu

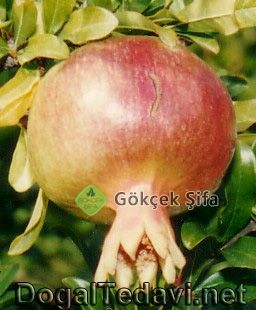
    Nar, Granataapfelbaum, Punica granatum

    Familyası: Nargillerden, Granatabaumgewachse, Punicaceae

    Drugları: Gövde kabuğu: Granati cortex
    Kök kabuğu: Granati radix cortex
    Meyve kabuğu: Garanti fructus cortex
    Meyvesi: Garanti fructus

    Narın Gövde, dal, kök ve ya Meyve kabuğunun çayı içilir, Meyvesi yenir, Şurupları ve ya reçelleri yapılır.

    Giriş: Aslı vatanı Pakistan olduğu tahmin edilin buradan Hindistan, Çin, İran, Türkiye ve Akdeniz Ülkerlerine yayıldığı İspanya’ya Endülüs devletinin kurulmasıyla birlikte MS. 8. yüzyılda geldiği bilinmektedir. Narın bilinen sadece iki türü vardır ve ikiside aynı şekilde kullanılır en yaygın olanı ve bilinen Punica granatum’dur ve nadiren de Punica protopunica kullanır. Punica Kuzey Afrika da bir yörenin adıdır, buradan Avrupa ya yayıldığında bu adla anılır, granatum ise tohum anlamına gelir.

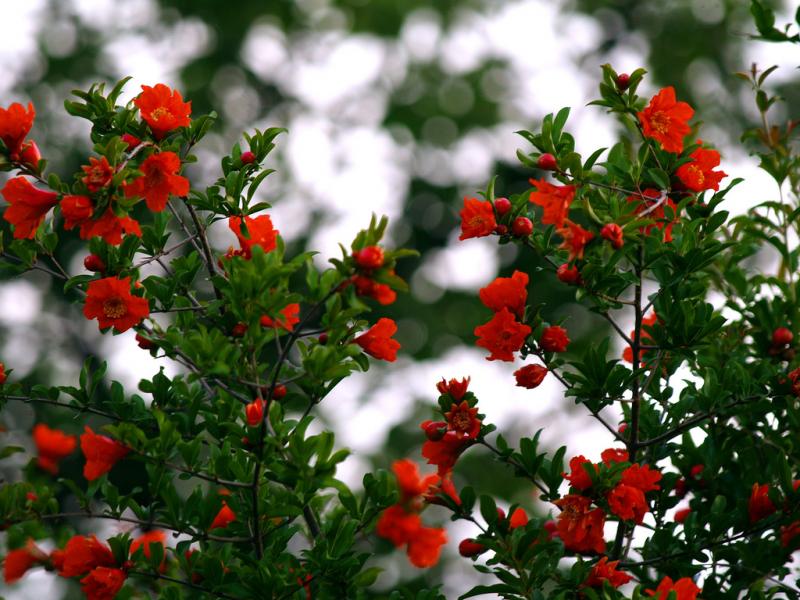
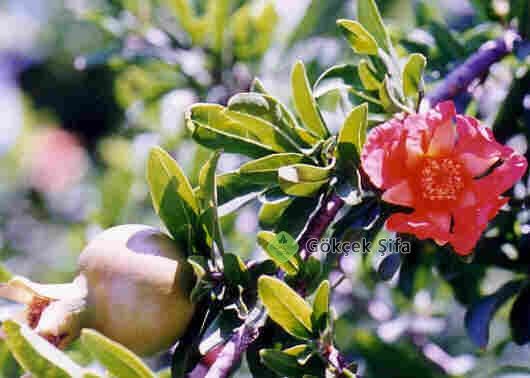
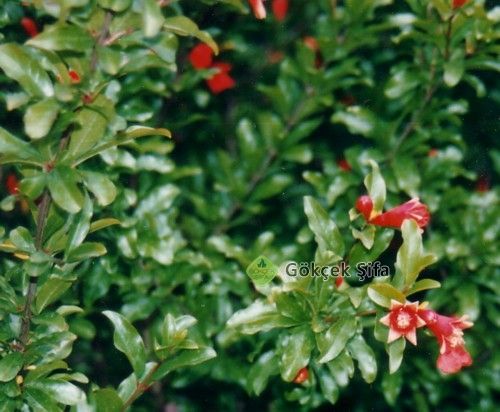
    Botanik: Nar ağacı 3-6 m boyunda bazen bir çalı bazen de ağaç şek-lindedir ve genellikle subtropik iklimde yetişir.
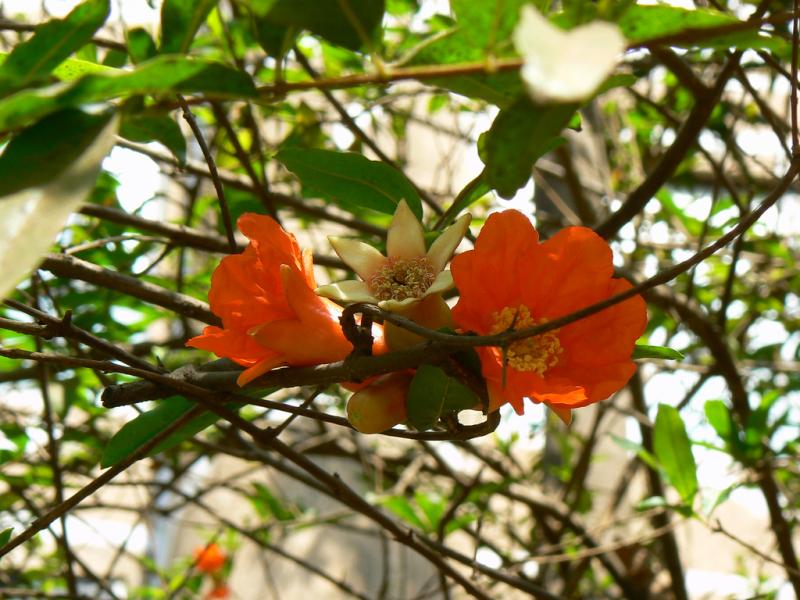
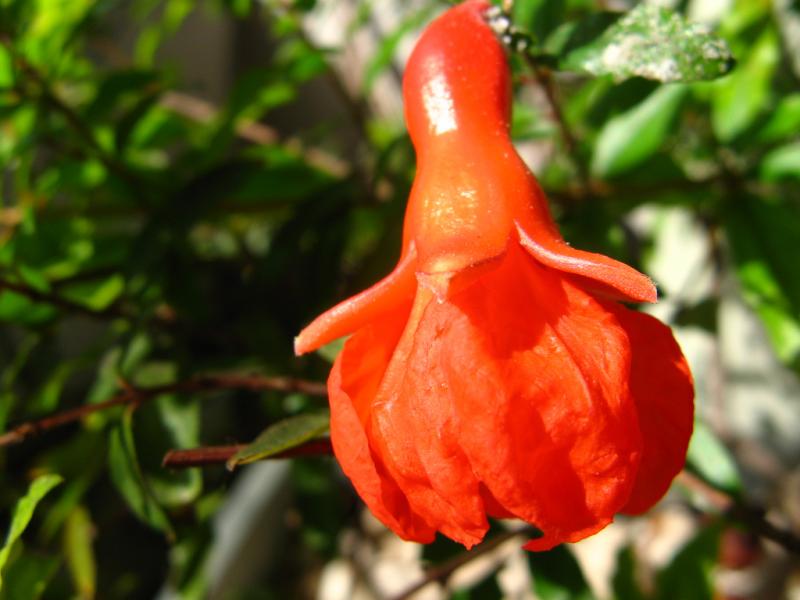
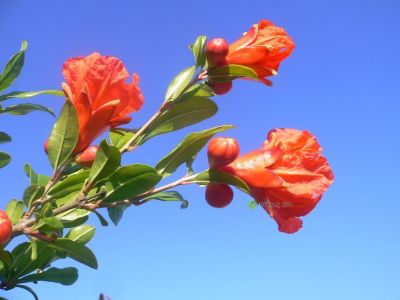
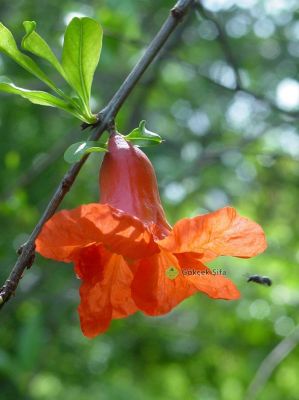
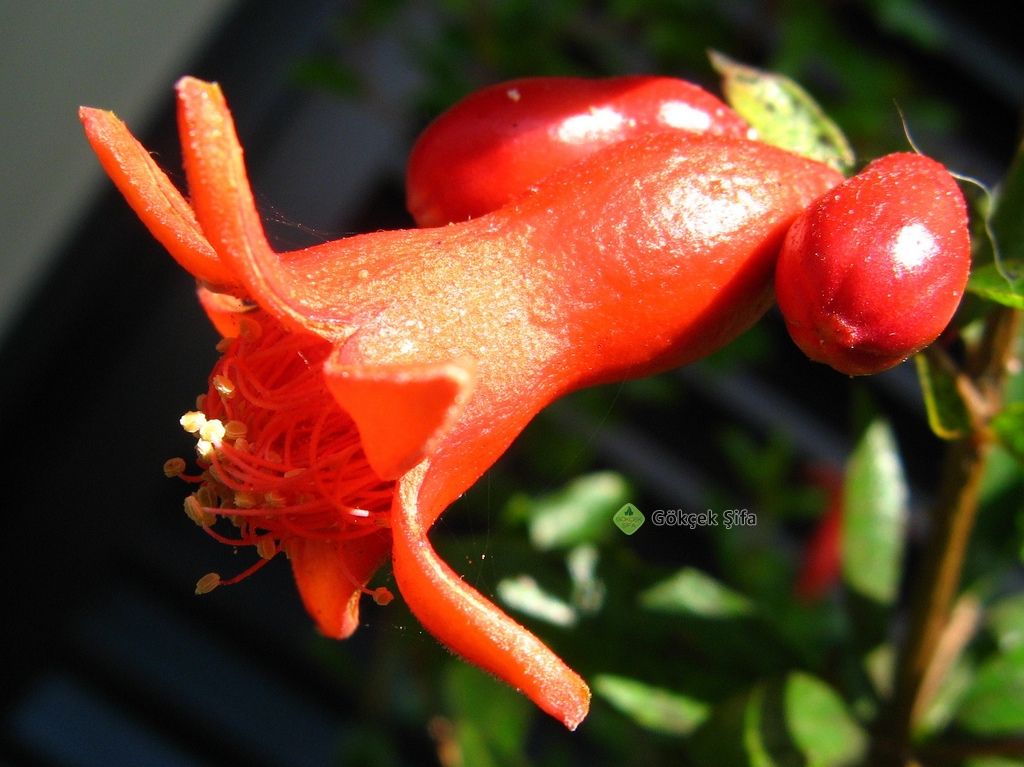
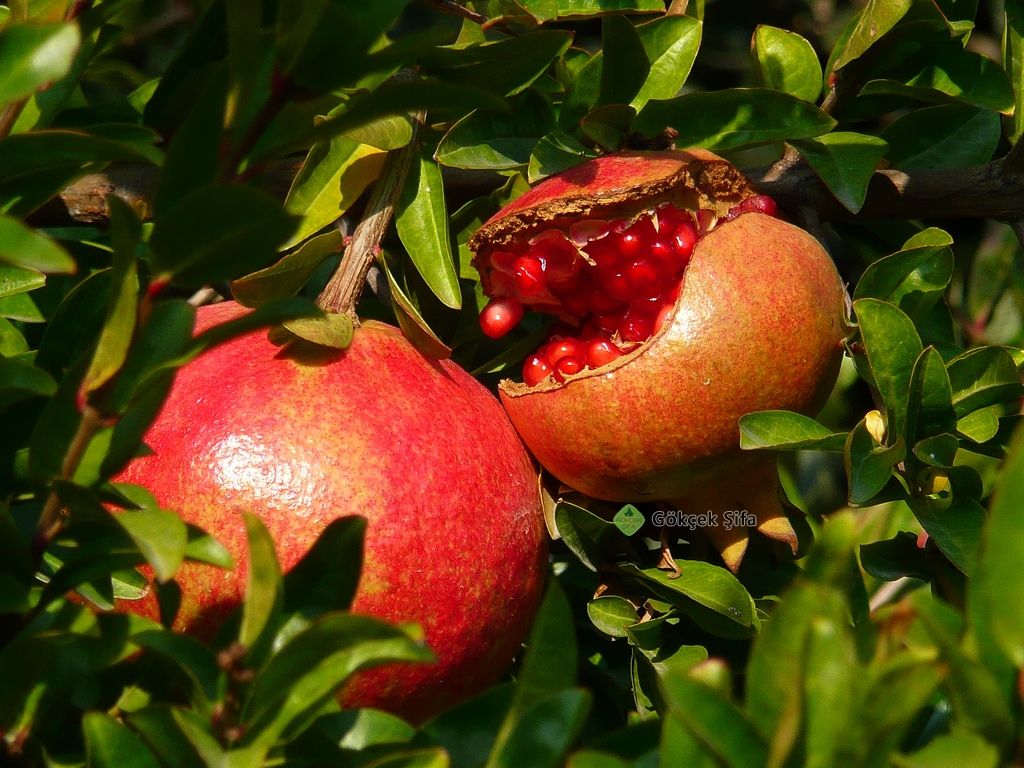
    Yaprakları 3-8 cm uzunluğunda, 1-3 cm genişliğinde oval ve uçlara doğru mızrak şeklinde, koyu yeşil renkli derimsi ve kenarları bütündür. Çiçeklerinin Taç yaprakları ters yumurta şeklinde uç kısmı küt 2-3 cm uzunluğunda 1-2 cm eninde, narin, koyu kırmızı 5-7 adet olabilir ve göbekte 18-25 adet döllenme tozluğu bulunur. Kupa yaprakları 5-8 adet gerisi kupa şeklinde uç kısımları 5-7 adet sivri üçgen şeklinde derimsi kiremit kırmızısı gerisindeki şişkinlik zamanla büyüyerek meyveye dönüşür. Meyveleri 5-10 cm çapında küre şeklinde içinde 6-9 adet ince zarla birbirinden ayrılan bölümlerden oluşmuş ve içi sulu tohumlarla doludur.

    Yetiştirilmesi: Türkiye’nin Akdeniz, Ege ve Marmara bölgesini güneyinde rahatlıkla yetişir ve yetiştirilir. Eğer bölgelerde kışın sera ve ya odalara alınırsa oralarda da yetiştirilebilir.

    Hasat Zamanı: Meyveleri Son baharda olgunlaşınca toplanır, Kabukları Mayıs Eylül’e kadar toplanarak kurutulur ve özel kaplarda muhafaza edilir.

    Bileşimi: Meyve suyu, Pvitamini aktivitesi gözteren maddeler yönünden zengindir. Meyve suyunda invert şeker, sitrik, malik, tartarik, fumarik, süksinil, askorbik, galik ve elajik asit ayrıca kafeik, klorojenik, p- kumarik, quimik, tiami, C vitamin, B1 ve B2 vitaminleri, riboflavin, çeşitli amino asitler, flavonlar, flavon-3oller içerir.

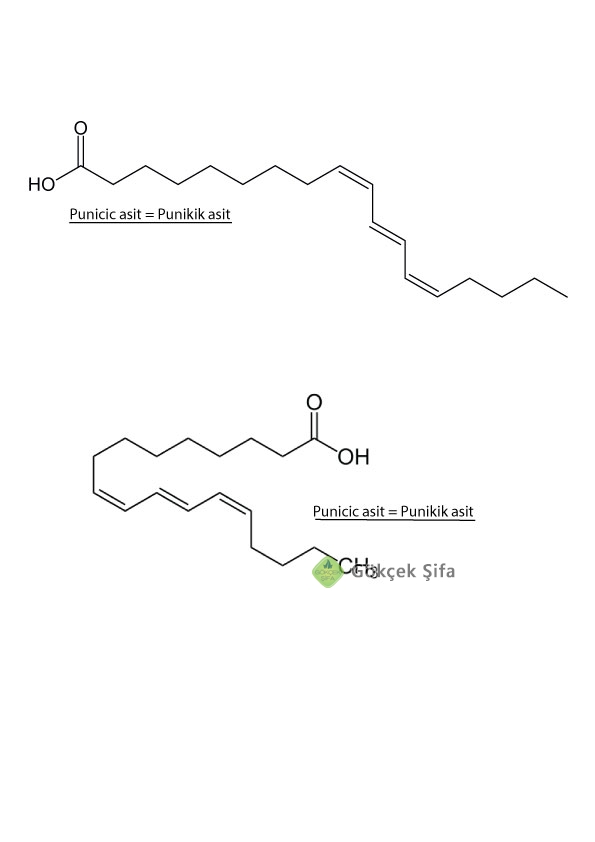
    Narçekirdeğinde: 100 kg Nar’dan 500 ml Nar Çekirdeği Yağı elde edlir. Nar Çekirdeği Yağı ligan yapısında maddeler; izolarisiresinol, mateiresinol, pinoresinol, sekoizolarisiresinol ve siringaresinol. Yağ asiti bileşiminde mono, di ve trigliseritler, serbet yağ asitleri ile birlikte majör bileşen olan punicic asit (punikik asit), 4-metillaurikasit, 1,3 dimetilstearik asit, steroller; stigmasterol, ß-sitosterol, kumosterol, ve kolesterol bulunmuştur. Ayrıca tohumlarında hormonlar; 17alfa-estradiol, estron, estriol, ve testosteron, fenil alifatik glikozitler, ve fosfolipitler bulunmuştur. (FFD Monografları S.520, Prof. Dr. Ömer Demirezer) Nar Çekirdeği Yağı hemen hemen hiç bi bitkide olmayan punikik asit içerir buna doymamış 3 çift bağlı yağ asidi gilereden olup kısaca OMEGA-5 Yağ asidi de denir. Punicic asitin açılımı: 9,11,13 Octadectren asit olarak geçer. Artı 17-alfa-Estradiol yani fitoöstojen=bitkiselöstrojen içerir. Bu bitkisel östrojen menopoz rahatsızlığı içine idealdir.

    Gövde kabukları % 18-25 oranında Tanin, çok miktarda % 0,3-0,6 oranında Piperidinalkoloitler; Pseudopelletierin , Izo pelleritin ve metil pelletieirin içerir. Kök kabukları % 20-27 Tanin, Alkoloitlerden; Izo Pelletierin, N-Metilizopelletierin, Pseudopelletierin, Hygrin ve Norhyrin’i sayabiliriz. Meyve kabukları; % 22-28 Tanin bunların içinde; Punicalin (=Granatin D), Punucalagin (=Granatin C), Granatin A Granatin B ve Gallusasidi sayabiliriz. Flovonitlere; Izoquercitrin, Antosiyanglikozitlere; Cyamidin -3- glukozit, Pelargonidin -3- glukozit, Cyanidin -3,5- diglukozit, Pelargonidin -3,5, diglukozit. (Şifalı Bitkiler ve Alternatif Tıp 2. Cilt, S. 984, İbrahim Gökçek)


    Araştımalar:
    Punica granatum suyu ve tohumları, arilleri ile hazırlanan ekstreler de değişik oranlarda antioksidan etki göstermiştir. (FFD Monografları S. 552, Prof. Dr. Ömer Demirezer)

    Punica granatum elajitanenlerinin farkakokinetiğini araştımak için 18 sağlıklı gönüllüye 180 ml nar suyu konsantresi verilmiş ve 6 saat sonra kan örnekleri alınmıştır. 24saatlik idrar numuneleri 1 gün önce, o gün ve 1 gün sonra test edilmiştir. Bu araştırma ve çalışma sonucu nar suyunun 4 saatte elimine olduğu tesbitedilmiştir. (FFD Monografları S. 524, Prof. Dr. Ömer Demirezer), İnsanlar ve fareler üzerinde yapılan çalışmalarda kanserli lezyonların çoğalmasını önlediği tesbit edilmiştir. (FFD Monografları S. 551, Prof. Dr. Ömer Demirezer)

    Koreli bir grup ilim adamının yaptığı klinik araştırmasında: Menopoz rahatsızlıkları olan 112 bayan üzerinde Nar Ekstraktı ve plasebo ile toplam 12 hafta süren tedavi denemesi yapılmıştır. Menopoz semptomları nar ekstraktı alanlarda iyileşme görülürken, plasebo alanlarda herhangi bir değişim olmamıştır. Her iki kontrol grubundaki bayanların kanında ki östrojen oranında herhangi bir değişim görülmemiştir. (KH, Kim SM, Yi KW, Park HT, Shin JH, Kim YT, Hur JY, Kim SH, Lee KW, Kim T. The Effect of Pomegranate on Postmenopausal Syndrome: A Randomized, Double-blind, Placebo-controlled Trial. J Korean Soc Menopause 2010 Aug 16(2):99-106. Korean.).

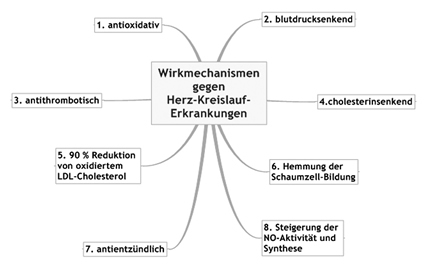
    Florida"da, 6-9 Mart tarihleri arasında yapılan Amerikan Kardiyoloji Koleji toplantısına katılan, Columbia Üniversitesi New York Presbyterian Hastanesi kardiyologlarından Doç. Dr. Özgen Doğan, yapılan son araştırmaların, narın damar tıkanıklığını önleyici özelliğini ortaya çıkardığını belirtti. "Hayvan deneylerinde, damar plakları ve tıkanıklıkları yüzde 44 gerilediği. İnsanlar üzerinde yapılan bir araştırma ise 2 hafta boyunca günde 50 ml nar yağının, tansiyonu artıran enzimi yüzde 36 düşürdüğünü gösterdi. "Doğal Punicic Asit Kaynağı" "Cilt Elastikiyetini Geliştirici" Nar, bilinen fonksiyonel gıdalar arasında ilk sıraya yerleşme yolunda hızla ilerlemektedir. Nar çekirdeği yağı alanında yapılan çalışmalar çok yeni olmasına karşın, alınan başarılı sonuçlar bu yağın önemini ve yağa duyulan ilgiyi tüm Dünyada artırmıştır. Yapısında, Punicic asitin yanı sıra %0,6 oranında antioksidan özellikteki polifenoller, yüksek oranda da E Vitamini bulunmaktadır. Nar çekirdeği yağı üç çift bağ içeren konjuge yağ asitlerini ( CLA ) yapısında bulunduran ender bitkisel kökenli yağlardandır.

    Konjuge yağ asitlerinin üç çift bağ taşıması özelliğinin, lösemi hücreleriyle mücadelede iki çift bağ bulunduran yağ asitlerine göre daha üstün olduğunu göstermiştir. (Dr.Kimy. Neslihan GÜRBÜZ, Turkiye Klinikleri J Med Sci 2006, 26:312-318, de yayınlanan makalesi)

    Nar çekirdeği yağının meme kanserinde kanserli hücrelerin kendi kendini yok etmesini (apoptosis) teşvik ettiği yolunda bulgular ortaya konmuştur. (Teknoloji Technion-İsrail Enstitüsü Dr Ephraim Lansky, New York’dan Dr Martin Goldman, Houston MD Anderson Kanser Merkezi Doçenti Dr Lansky, Ege Üniversitesi, İlaç Geliştirme ve Farmakokinetik Araştırma-Uygulama Merkezi Prof.Dr. Ulvi Zeybek )

    Açıklama:
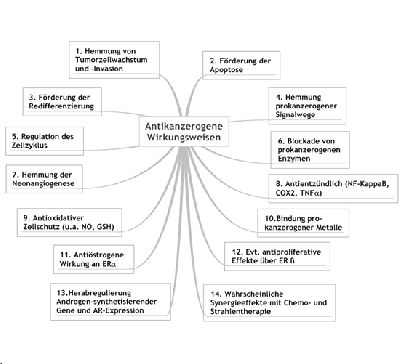
    Nar kabuğu ekstraktı ve nar çekirdeği yağının birleşiminde ki punikik asit serbest radikalleri yok eder ve bağışıklık sistemini güçlendirir. Fakat daha önemlisi nar kabuğu ekstraktı ve çekirdeğinin yağında bulunan elajik asit p53 genini korur ve onu güçlendirir ve de kanseri tetikleyen molekülleri kendine bağlıyarak zararsız hale getirir. Güney Caronina Tıp Üniversitesi Kanser Merkesinden Dr. Nixon elajik asit ile yaptığı çalışmalar sonucu elajik asitin kanserli hücrelere karşı etkili olduğunu belgelemiştir. Amerikan Kanser Derneğinin Tamamlayıcı Ve Alternatif Tıp ta Kanser Yöntemleri (The American Cancer Society's Guide to Complementary And Alternative Cancer Methods) 1968 yılında yaptığı bir araştımada Çilek teki elajik asit’in (Nar’da daha yoğun orada bulunur) antikanserojen ve antimutajenik (hücre yapısının bozulmasını önleyici) olduğunu belgelemiştir.

    Zerdeçal’ın birleşiminde ki curcumin aynı p53 geni (protein) gibi etki ederek kanserli hücreleri öldürmektedir. Bu nedenle kanser hastalarının mutlaka kanserin ilk devrelerinde curcumin (zerdeçal ekstraktı) kullanıldığında kanserli hücreleri öldürdüğü ve bağışklık sistemini güçlendirdiği belgelenmiştir. Zerdeçal’ın birleşiminde ki etken madde curcumin %3-4 oranında olduğundan zerdeçal tozu yeterli değildir, mutlak suretle ekstresinin kullanılması gerekir. COX 2 Enzimi (sikloolsijenaz enzimi) bütün iltihabi hastalıklarda artar ve ağrılara sebep olur. COX 2 araşidonik asidi prostaglandin ve eikosanoidlere dönüştürür. Curcumin COX 2 enzimini baskılar ve iltihaplı hastalıkları önler. Zerdeçal sadece kansere karşı değil aynı zamanda; alzheimer, felç, gastrit, romatizma, sedef, egzama, stres, depresyon, ms, kron, kolit ve çölyak gibi rahatsızlıklara karşı kullanılır.

    Kolloidal Platin; İnsan bünyesinde 4000 Enzim salgılanır ve farklı farklı enzimler var. Enzimler, hücreler’de üretilen özel proteinlerdir. Proteinler hücrede, DNA'daki kalıtsal bilgiye (gen) göre sentezlenir. Enzimlerin proteinden oluşan kısmına apoenzim denir. Pepsin, üreaz gibi bazı enzimler yalnız proteinden oluşur bunlara basit enzim denir. Enzimlerin çoğunda ise vitamin ya da mineralden oluşan, aktifleştirici kısımları vardır bu enzimlere bileşik enzim denir. Aktif kısım vitaminden oluşmuş ise koenzim, mineralden oluşmuş ise kofaktör adını alır. Koenzimlerin esas bileşenleri özellikle B grubu vitaminlerdir. Kofaktör, inorganik özellikteki yardımcı kısımdır. Ca+2, Mg+2, Zn+2, K+ ,Na+, Cu+2 ,Fe+2, Pt +2 gibi metal iyonları birçok enzimde kofaktör olarak iş görür. Enzimlerin esas iş yapan bölümü koenzim ya da kofaktör kısmıdır ve enzimin protein olan bölümüne göre daha küçüktür. Enzimin hangi maddeye etki edeceğini protein kısmı belirler. Koenzim Platin’den oluşur ise enzim kanserli hücreyi tanır ya yok eder veya tamir eder. Mineraller ve vitaminler enzimin beyni gibidir. Binlerce molekülden oluşan enzimlerin beyni diyebileceğimiz kısım vitamin ve minerallerden oluşan aktif kısımdır. Enzimler saniyede binlerce işlem yapacak kapasiteye sahiptir.

    P53 Geni kanser vakalarında çok çok önemli;
    P53 geni hücre çekirdeğinde ki DNA’nın içindeki kromozomlardan 17. Kromozmda bulunur. P53 geni veya protein’nın bir çok görevi vardır. Bu görevler; DAN yapısı ve dokusu bozulmuş ve hasara uğramışsa DNA yı tamir eder ve yeniler. Bir çok dış etkenden dolayı; serbest radikallerin saldırısı, florid zehirlenmesi, alüminyum zehirlenmesi, GDO lu besinler, bakteri, virüs ve mantarların ve bunların üretiği toksik maddelerin yapmış olduğu tahribatlar sonucu hücreler de kanser görülür. Günde ortalama her insanda 400-500 kanser hücresi oluşur ve hücre çekirdeğinde kromozom içinde 17. Kromozomdaki p53 geni hemen devreye geçer ve tahrip olan hücreyi tamir eder veya tamir edilmiyecek durumda ise o hücreyi öldürür. Bir çok faktörden dolayı p53 geni azalır ise kanseri durdurmak mümkün olamaz.

    Kullanılması:
    Nar Kabuğu Ekstresi ile yapılan çalışmalarsonucu birleşiminde ki punikik asitin kansere karşı etkili olduğu tesbit edelmiştir. Nar suyu ve tohumlarını antioksidan olduğu tesbit edilmiştir. Nar tohum yağının kansere karşı etkisi üzerindeki çalımalar sonucunda olumlu neticeler elde edilmiştir. (FFD Monografları S. 550, Prof. Dr. Ömer Demirezer). Kabukları eskiden bağırsaktaki tenyalara karşı kullanıl-mıştır.

    Çayı: Bağırsak tenyalarına karşı 50 gram kabuk 5-6 saat 500-600 ml suda bekletilir ve sonra hafif ateşte 250-300 ml su kalana kadar bekletilir ve süzülür suya şeker ve ya Bal katılarak içilir. Kabuklardaki (Gövde ve ya Kök) alkoloitler Tenyaların kaslarını uyuşturarak onları sersemletir ve tenyalar bağırsak mukazasını bırakarak serbest kalır. Bu halde yine kendiliğinden düşmez, onu düşürmek içi Hinç yağı ve ya suda eritilmiş İngiliz tuzu içmek gerekir.Halk arasında Nar meyvesinin Mide- Bağırsak, Karaciğer, Kalbe iyi geldiği ve cinsel gücü artırdığı söylenmektedir.

    Yan Tesirleri: Bir defada 50 gram Kabuktan (Gövde,Dal ve Kök) içilmesi sağlığa zararlı olabilir. Bu nedenle Doktor bilgisi dahilinde kullanılması daha uygundur.

    ibrahim Gökçek
    Engin Deveci
    Kullanıp FAYDASINI GÖRDÜĞÜM ürünlerdir.İnsanın VÜCUDUNU TEMİZLİYOR. Diğer ürünlerle birlikte SİGARAYI BİLE BIRAKMANIZI SAĞLIYOR. (NAR ÇEKİRDEĞİ YAĞI)
    KAYNAK

    Alev Terziler
    Ben kullanıyorum (NAR ÇEKİRDEĞİ YAĞI) HEM İÇİYORUM hem CİLDİME SÜRÜYORUM tavsiye ediyorum herkese hocama da teşekkür ederim
    KAYNAK

    Meryem Lale Öztürk
    NAR ÇEKİRDEĞİ YAĞI aldım şahane teşekkürler
    KAYNAK

    Fatih Çınarlar
    İbrahim Gökçek beyden Allah razı olsun bundan seneler önce hiçbir şifalı bitki bilgim yoktu NAR ÇEKİRDEĞİ YAĞI nedir bilmezdim ALOE VERA nedir bilmezdim SPİRULİNA nedir bilmezdim SÖĞÜT nedir bilmezdim GEVEN JEL nedir bilmezdim KETEN TOHUMU YAĞI nedir bilmezdim ve daha niceleri BİZİ AYDINLATTIĞI İÇİN İBRAHİM GÖKÇEK HOCAMA TEŞEKKÜR EDİYORUM ve çevremdeki kişilerede anlatıyorum ürünlerini sağlıcakla.
    KAYNAK
    Konu mert tarafından (https://bitkiara.com/vb5/member/685-mert Saat 01 December 2021, 10:30 ) değiştirilmiştir.

  • #2


    .................................................. ........

    Yorum yap


    • #3
      Punicalagin, ROS-JNK-BCL2 yolu yoluyla rahim ağzı kanserinde insan papilloma virüsü E6 ve E7 proteinlerinin otofajik bozulmasını destekler

      Xialin Xie , a, c Liuyi Hu , a, c Lulu Liu , d Jiuru Wang , a, c Yongai Liu , a, c Li Ma , b, c Guangying Sun , b Changfei Li , a, ⁎ Haji Akber Aisa , b, ⁎ ve Songdong Meng a, ⁎
      Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
      Ana Patojenik Mikrobiyoloji ve İmmünoloji Laboratuvarı , Mikrobiyoloji Enstitüsü, Çin Bilimler Akademisi
      b Xinjiang Yerli Tıbbi Bitkiler Kaynak Kullanımının Temel Devlet Laboratuvarı Temeli, Xinjiang Teknik Fizik ve Kimya Enstitüsü, Çin Bilimler Akademisi, Xinjiang, (DOĞU TÜRKİSTAN,UYGUR BÖLGESİ) Çin
      c Çin Bilim Akademisi Üniversitesi, Pekin, Çin
      d Fiziksel Bilim ve Bilgi Teknolojisi Enstitüsü, Anhui Üniversitesi
      Changfei Li: moc.361@6002iefgnahcil ; Hacı Akber Ayşe: nc.ca.bjx.sm@ijah ; Songdong Meng: nc.ca.mi@dsgnem
      ⁎ İlgili yazarlar. moc.361@6002iefgnahcil , nc.ca.bjx.sm@ijah , nc.ca.mi@dsgnem İlişkili Veriler

      Ek Malzemeler
      Git: Soyut


      Nar kabuğundan elde edilen punicalagin'in çeşitli kanserlere karşı büyümeyi önleyici etkiler gösterdiği bildirilmektedir. Ancak altta yatan mekanizmalar aydınlatılamamıştır. Büyük bir onkovirüs olan insan papilloma virüsü (HPV), replikasyonunu desteklemek için konak otofajik mekanizmasını kullanır. Burada punikalagin, otofaji-lizozom sistemi yoluyla rahim ağzı kanseri hücrelerinde ana HPV onkoproteinleri E6 ve E7'nin seviyelerini belirgin şekilde aşağı regüle etti. Ek olarak, punikalagin reaktif oksijen türleri (ROS)-JNK yolunu aktive etti ve BCL2'nin fosforilasyonunu destekledi, bu da BCL2'nin BECN1'den ayrılmasına ve otofajinin indüklenmesine yol açtı. Otofaji ve JNK inhibitörleri veya ROS temizleyicileri ile tedavi, punikalagin kaynaklı E6 ve E7 bozulmasını hafifletti. Ayrıca, ATG5'in nakavtkümelenmiş düzenli aralıklı palindrom tekrar/Cas 9 sisteminin kullanılması, punikalagin kaynaklı E6/E7 aşağı regülasyonunu hafifletti. Bu, punikalagin kaynaklı E6 ve E7 bozulmasının otofajiye bağlı olduğunu gösterdi. İn vivo çalışmaların sonuçları, punikalagin'in servikal kanser büyümesini etkili bir şekilde inhibe ettiğini göstermiştir. Sonuç olarak, bu çalışma, E6 ve E7'nin punikalagin kaynaklı otofajik bozunmasının bir mekanizmasını açıkladı. HPV'nin neden olduğu rahim ağzı kanseri için bir terapötik olarak punikalagin'in gelecekteki uygulamalarını mümkün kılacaktır.

      Anahtar Kelimeler: Punicalagin, E6, E7, Rahim ağzı kanseri, Otofaji
      Git: giriiş


      Çift sarmallı bir DNA virüsü olan insan papilloma virüsü (HPV), dünya çapında kadınlar arasında en ölümcül kanserlerden biri olan rahim ağzı kanserinin başlıca etiyolojik ajanıdır. HPV'ler patojenitelerine göre yüksek riskli ve düşük riskli tipler olarak sınıflandırılabilir. Yüksek riskli tipler olan tip 16 ve 18 HPV'ler invaziv serviks kanserlerinin yaklaşık %70'inin etiyolojik ajanıdır [1] . Tip 16 ve 18 HPV enfeksiyonlarının ciddi sonuçları, iki dönüştürücü onkoprotein E6 ve E7'ye atfedilebilir. E6 esas olarak p53'ü hedefler ve bozar. Bu arada, E7, E2F1 (E2F transkripsiyon faktörü 1) ve diğer protein faktörleri ile etkileşime giren retinoblastomun (Rb) degradasyonu yoluyla hücre döngüsü durdurma, apoptoz ve farklılaşmanın modüle edilmesinde rol oynayan genlerin ekspresyonunu düzenler [ 2, 3 ]. HPV, p53 ve Rb'nin modülasyonu yoluyla servikal karsinogenezi destekler. Ek olarak, E6, STAT3'ü (sinyal dönüştürücü ve transkripsiyon aktivatörü) aktive ederek hücre proliferasyonunu ve servikal karsinogenezi destekler [4] . E6 ve E7 ekspresyonu, HPV pozitif servikal kanserde sürdürülür ve HPV-pozitif servikal kanser hücrelerinin ve bunların ksenogreftlerinin in vivo ölümsüzlüğünü sürdürmek için sürekli E6 ve E7 ekspresyonu gerekir [2]. Rahim ağzı kanseri için çeşitli E6 ve E7 tabanlı terapötik stratejiler geliştirilmiştir. Örneğin, E7'yi hedefleyen kısa enterferans yapan RNA (siRNA) ile transfeksiyon, aynı anda E6 ve E7'nin ekspresyonunu aşağı regüle etti ve HeLa hücrelerinde yaşlanmayı indükledi. Ek olarak, E6'ya bağlanan spesifik ligandlar ve bloke edici peptitler, p53 aracılı hücresel sinyal yolunu yeniler [5] , [6] , [7] .

      Son zamanlarda, HPV-pozitif kanser tedavisi için birkaç yeni küçük moleküler ağırlıklı bileşik geliştirilmiştir. Bir deniz Streptomyces sp'den türetilen dokosaheksaenoik asit ve antimisin analogları . HPV-pozitif rahim ağzı kanseri hücrelerinde E6 ve E7'nin bozunmasını teşvik ettikleri ve hücre apoptozunu indükledikleri için rahim ağzı kanseri için yeni terapötikler olarak kabul edilirler [ 8 , 9 ].

      Punicalagin, nardan elde edilen polifenolik bir tanendir. Önceki çalışmalar, punikalajinin anti-kanser, anti-inflamatuar, antioksidan ve antiviral aktiviteler dahil olmak üzere çeşitli biyolojik aktiviteler sergilediğini öne sürmüştü [10] , [11] , [12] . Punicalagin , kolon kanseri, akciğer kanseri, serviks kanseri ve meme kanseri hücreleri dahil olmak üzere in vitro çeşitli kanser hücrelerinde proliferasyonu baskılar ve apoptozu veya otofajik hücre ölümünü indükler [13] , [14] , [15] , [16] , [ 17] , [18] , [19] , [20]. Ek olarak, punikalagin, bağışıklık sistemi düzenlemesi ve antiviral süreçlerde yer alır. Önceki çalışmalar, punikalagin'in RAW264.7 hücrelerinde iltihabı baskıladığını, murin makrofaj polarizasyonunu modüle ettiğini ve NFAT'nin (aktive edilmiş T hücrelerinin nükleer faktörü) inhibisyonu yoluyla immünosupresif aktiviteler uyguladığını bildirmiştir. Ayrıca punikalagin, sırasıyla viral nöraminidaz ve kovalent olarak kapalı dairesel DNA'yı hedefleyerek influenza ve hepatit B virüslerini etkili bir şekilde inhibe edebilir [ 11 , 12 , [21] , [22] , [23]]. Anti-tümör, anti-inflamatuar ve antiviral aktivitelerin altında yatan mekanizmalar değişiklik gösterir. Ancak punikalagin'in biyolojik işlevleri üzerine yapılacak çalışmalar, gelecekteki klinik uygulamaları için temel oluşturacaktır.

      Önceki çalışmalar, punikalagin'in rahim ağzı kanserine karşı büyümeyi önleyici faaliyetler sergilediğini göstermiştir. Ancak altta yatan mekanizmalar aydınlatılamamıştır. Bu çalışma, ana onkoproteinler üzerindeki etkisine özel olarak odaklanarak, punikalajinin serviks kanserine karşı büyümeyi inhibe edici aktivitelerinin altında yatan mekanizmayı incelemeyi amaçlamıştır. Bu çalışmanın bulguları, rahim ağzı kanseri için yeni tedavi stratejilerinin geliştirilmesine olanak sağlayacaktır.

      Git: Malzemeler ve yöntemler

      Hücre kültürü


      Rahim ağzı kanseri hücre dizileri (HeLa ve SiHa hücreleri), American Type Culture Collection'dan satın alındı. HeLa ve SiHa hücreleri için STR profillemesi, bu iki hücre hattının doğrulandığını doğrulamak için Biowing Applied Biotechnology şirketi (Şangay, Çin) tarafından gerçekleştirildi. Hücreler, sırasıyla %10 fetal sığır serumu (FBS; Gibco, ABD), 100 U/mL ile takviye edilmiş Dulbecco'nun modifiye Eagle's ortamı (Hyclone, ABD) ve minimal temel ortam/Earle's dengeli tuz çözeltisi (Hyclone, ABD) içinde kültürlendi. penisilin ve 100 μg/mL streptomisin (Yeasen, Şangay, Çin). Tüm hücreler %5 C02 ve 37°C'de kültürlendi ve her üç günde bir %0.25 tripsin (Gibco, ABD) kullanılarak pasajlandı. Regentler ve antikorlar


      Punicalagin, Macklin'den satın alındı ​​(saflık ≥ %98, yüksek performanslı sıvı kromatografisi kullanılarak belirlendi; Şanghay, Çin). Anti-HPV tip 16/18 E6 ve anti-HPV tip 16/18 E7 antikorları sırasıyla Novus ve Genetex'ten satın alındı. Yaban turpu peroksidaz (HRP)-konjuge keçi anti-fare ve keçi anti-tavşan ikincil antikorları, Zhongshan Goldenbridge Biotechnology'den (Pekin, Çin) satın alındı. Diğer tüm antikorlar, Cell Signaling Technology'den satın alındı. LipoRNAi transfeksiyon reaktifi, MG-132 ve radyoimmünopresipitasyon tahlili (RIPA) liziz tamponu Beyotime'dan (Şanghay, Çin) satın alındı. TRIzol, Invitrogen'den satın alındı. E64d, pepstatin A, SP600125 (JNK inhibitörü) ve 3-metiladenin (3-MA) ​​(PI3KC3 inhibitörü) Sigma-Aldrich'ten satın alındı. Reaktif oksijen türleri (ROS) süpürücü N-asetil-L-sistein (NAC), Selleck'ten elde edildi. Sikloheksimid (CHX), Absin'den satın alındı. Antikorların ve reaktiflerin detayları Tablo S1 ve Tablo S2'de listelenmiştir. siRNA transfeksiyonu


      Tüm siRNA'lar RiboBio (Guangzhou, Çin) tarafından sentezlendi. JNK'yi hedeflemek için kullanılan anti-duyu dizisi 5′-UCACAGUCCUGAAAACGUA-3′ idi. HeLa hücreleri, üreticinin talimatları izlenerek lipoRNAi transfeksiyon reaktifi kullanılarak JNK1'e karşı siRNA'larla transfekte edildi. Kısaca hücreler, transfeksiyondan bir gün önce 6 oyuklu plakalara ekildi. Hücreler %70-80 konfluensa ulaştıktan sonra transfeksiyon yapıldı. Ortam, %10 FBS ve penisilin-streptomisin ile takviye edilmiş taze tam ortam ile değiştirildi. Altı oyuklu plakaların ayrı ayrı kuyularında hücreler, 48 saat boyunca 125 uL Opti-MEM, 100 nM siRNA ve 5 uL transfeksiyon reaktifi karışımı ile inkübe edildi. Devrilme verimliliği western blotlama kullanılarak değerlendirildi. Birlikte immünopresipitasyon ve western blotlama


      Hücreler, hücre liziz tamponunda (Beyotime) 30 dakika boyunca parçalandı. ve ubiquitin tespiti için hücreler, lizizden önce 6 saat boyunca 50 uM MG 132 ile işlendi. Lizatlar 14000 g'de 30 dakika santrifüj edildi . Süpernatandaki protein konsantrasyonu ölçüldü. Daha sonra, süpernatandaki proteinler antikorlarla gece boyunca 4°C'de inkübe edildi, ardından protein A/G artı agaroz boncukları (Santa Cruz, ABD) ile 4 saat inkübe edildi. Boncuklar, buz gibi soğuk fosfat tamponlu tuzlu su (PBS, pH 7.4) ile üç kez yıkandı. Tam hücre lizatları, 2x yükleme tamponu ile 100°C'de 10 dakika süreyle inkübe edildi. Numuneler, sodyum dodesil sülfat-poliakrilamid jel elektroforezi (SDS-PAGE) kullanılarak çözüldü.

      Western lekeleme, daha önce tarif edildiği gibi yapıldı. Kısaca, hücreler oyuklardan sıyrıldı ve buz üzerinde 30 dakika boyunca 10 mM fenilmetilsülfonil florür içeren RIPA içinde parçalandı. Lizat, 12000 rpm'de ve 4°C'de 20 dakika santrifüjlendi. Süpernatan kaynatıldı ve protein konsantrasyonu, bir bisinkoninik asit protein tahlil kiti (Takara, Japonya) kullanılarak belirlendi. Eşit miktarda protein, SDS-PAGE'ye tabi tutuldu. Çözülen proteinler bir poliviniliden diflorür membranına aktarıldı. Membran, oda sıcaklığında 1 saat boyunca Tween-20 ile Tris-tamponlu tuzlu su içinde %5 yağsız süt ile bloke edildi, ardından gece boyunca 4°C'de birincil antikorlarla inkübasyon yapıldı. Sonraki, zar üç kez Tween-20 (10 dakika/adım) ile Tris tamponlu tuzlu su ile yıkandı ve karşılık gelen HRP-konjuge sekonder antikorlar ile inkübe edildi. Ayrıca, membran üç kez (10 dakika/adım) yıkandı ve immünoreaktif sinyaller, arttırılmış kemilüminesans kullanılarak tespit edildi. Kantitatif gerçek zamanlı polimeraz zincir reaksiyonu (qRT-PCR)


      Üreticinin talimatları izlenerek TRIzol kullanılarak HeLa hücrelerinden toplam RNA izole edildi. İzole edilen RNA, PrimeScript RT Master Mix (Takara, Japonya) kullanılarak aşağıdaki termal döngü koşulları altında tamamlayıcı DNA'ya (cDNA) ters kopyalandı: 37°C 30 dakika ve 85°C 5 saniye ve 4°C'de tutuldu. qRT-PCR analizi, üreticinin talimatları izlenerek SYBR Green Ex Taq karışımı (Takara, Japonya) kullanılarak yapıldı. Her numune üç kopya halinde analiz edildi. PCR koşulları aşağıdaki gibidir: 30 saniye boyunca 95°C, ardından 10 saniye boyunca 40 döngü 95°C ve 45 saniye boyunca 60°C. E6 ve E7'nin mRNA seviyeleri, qRT-PCR kullanılarak ölçüldü. GAPDH ve beta-aktiniç kontrol olarak kullanılmıştır. qRT -PCR analizi için aşağıdaki primerler kullanıldı: HPV tip 18 E6 , 5'-ATAAGGTGCCTGCGGTGCC-3' (ileri) ve 5'-TGCGTCGTTGGAGTCGTTC-3' (ters); HPV tip 18 E7 , 5′-GAGCACGACAGGAACGACT-3′ (ileri) ve 5′-GGGCTGGTAAAATGTTGATGAT-3′ (ters); GAPDH , 5′-CGGAGTCAACGGATTTGGTCGTAT-3′ (ileri) ve 5′-AGCCTCTCCATGGTGGTGAAGAC-3′ (ters); beta-aktin , 5'-GACGACATGGAGAAAATCTG-3' (ileri) ve 5'-ATGATCTGGGTCATCTTCTC-3' (ters). Hedef mRNA ifadesinin kat değişimi 2- ΔΔCt yöntemi ile analiz edildi. otofajik akı


      Otofaji akışı, üreticinin talimatları izlenerek AdPlus-mCherry-green floresan proteini (GFP)-LC3B adenovirüsü (Beyotime) kullanılarak analiz edildi. HeLa hücreleri, 24 saat boyunca adenovirüs ile enfekte edildi ve çeşitli ilaçlarla tedavi edildi. GFP, mCherry veya her ikisi için pozitif olan hücreler, bir konfokal floresan mikroskobu (Leica Microsystems) kullanılarak görselleştirildi. Otofajik akı, GFP ve mCherry'nin noktalı kalıpları analiz edilerek belirlendi. Koloni oluşum tahlili


      24 saat boyunca 6 oyuklu bir plakaya (1.5 x 10³ hücre/oyuk) kaplanmış hücreler punikalagin ile inkübe edildi. İşlemden sonraki 14. günde hücreler iki kez PBS ile yıkandı, metanol ile 30 dakika sabitlendi ve kristal mor boyamaya tabi tutuldu. Hücre sayma kiti-8 testi


      HeLa ve SiHa hücrelerinin çoğalması, hücre sayma kiti-8 (CCK-8) (Dojindo, Japonya) kullanılarak belirlendi. Kısaca, 96 oyuklu bir plakaya ( 5x10³ hücre/oyuk) kaplanmış hücreler, farklı süreler boyunca farklı punikalagin konsantrasyonları ile inkübe edildi. Hücre canlılığı, üreticinin talimatları izlenerek CCK-8 kullanılarak belirlendi. transmisyon elektron mikroskobu


      Transmisyon elektron mikroskobu analizi için, HeLa hücreleri, 30 dakika boyunca oda sıcaklığında 0.1 M fosfat tamponu içinde %2.5 glutaraldehit ile sabitlendi, ardından gece boyunca 4°C'de inkübe edildi. Numuneler gömüldü, kesitlere ayrıldı ve bir transmisyon elektron mikroskobu (FEI Tecnai Spirit120kV) altında gözlemlendi. in vivo çalışma


      Fare çalışmaları, Çin Bilimler Akademisi Araştırma Etik Kurulu, Mikrobiyoloji Enstitüsü'nün düzenlemelerine göre yapıldı. Çalışma protokolü Araştırma Etik Kurulu tarafından onaylanmıştır (izin numarası PZIMCAS2011001). Tüm hayvan deneyleri, Laboratuar Hayvanlarının İşlenmesine İlişkin Kurumsal Yönergelere göre yapıldı. BALB/c çıplak fareler (dişi; 5-6 haftalık) SPF Biotechnology şirketinden (Pekin, Çin) satın alındı ​​ve SPF koşulları altında barındırıldı. HeLa hücre ksenograft modelini oluşturmak için, 5 × 10⁶HeLa hücreleri, çıplak farelerin sağ yan tarafına deri altından enjekte edildi. Fareler, ksenograftın ortalama çapı 5 mm'ye ulaştıktan sonra (6 fare/grup), punicalagin ile tedavi edilen grup, 20 mg/kg vücut ağırlığı dozunda intraperitoneal olarak punikalagin uygulanan fareler; PBS ile tedavi edilen grup, PBS ile intraperitoneal olarak uygulanan fareler. Tümör boyutu iki günde bir izlendi. Punicalagin/PBS uygulamasından sonraki 18. günde fareler kurban edildi. Western blot ve immünohistokimyasal analizler yapıldı. ROS değerlendirmesi


      Punicalagin ile muamele edilmiş hücreler, oksidasyona duyarlı floresan probu 2',7'-diklorofloresein diasetat (10 mM; Beyotime) ile 20 dakika boyunca 37°C'de inkübe edildi. Hücreler kültür ortamı ile üç kez yıkandı, hasat edildi ve akış sitometri analizine tabi tutuldu. Hücre apoptoz analizi


      Hücreler, 24 saat boyunca punikalagin ile muamele edildi, tripsinize edildi ve üreticilerin talimatları izlenerek hücre apoptoz kiti (Invitrogen, ABD) kullanılarak Annexin V-floresan izotiyosiyanat/propidyum iyodür boyamaya tabi tutuldu. Boyanmış hücreler akış sitometri analizine tabi tutuldu. immünohistokimya


      Tümör dokuları formalin ile sabitlendi, kurutuldu, parafin bloklara gömüldü, ince kesitler halinde kesildi ve cam lamlara aktarıldı. Kesitler %3 H 2 O 2 ile inkübe edildi.Endojen peroksidaz aktivitesini inaktive etmek için 10 dakika metanol içinde. Daha sonra kesitler, etilendiamintetraasetik asit antijen alma tamponu ile 100°C'lik bir su banyosunda 10 dakika süreyle inkübe edildi ve antijenik epitopun maskesini kaldırmak için oda sıcaklığına soğutuldu. Kesitler daha sonra 37°C'de %5 sığır serum albümini ile 30 dakika süreyle bloke edildi ve 37°C'de 30 dakika süreyle spesifik birincil ve ikincil antikorlarla inkübe edildi. Ayrıca kesitler streptavidin-biotin kompleksi ve 3,3'-diaminobenzidin ile inkübe edildi ve hematoksilen ile zıt boyandı. Son olarak kesitler immünohistokimyasal ve görüntü analizlerine tabi tutuldu. Kümelenmiş düzenli aralıklı palindrom tekrar/Cas 9 sistemi kullanılarak ATG5 nakavt HeLa hücre hatlarının oluşturulması


      pSpCas9 (BB)-2A-GFP plazmidi, Profesör Cuihua Liu'nun nazik bir hediyesiydi. ATG5'i hedefleyen tek kılavuzlu RNA (sgRNA) oligonükleotitleri tavlandı ve Bbs I (NEB, ABD) ile sindirilmiş vektöre bağlandı . ATG5'i hedeflemek için kullanılan sgRNA dizileri şu şekildeydi: 5′-CACCGTTCCATGAGTTTCCGATTGA-3' (ileri) ve 5'-AAACTCAATCGGAAACTCATGGAAC-3' (ters). HeLa hücreleri, lipofektamin 3000 reaktifi (Invitrogen, ABD) kullanılarak ATG5 sgRNA içeren vektör ile transfekte edildi . Transfeksiyondan 24 saat sonra, GFP pozitif tek hücreler, bir AriaIII akış sitometresi (BD, ABD) kullanılarak 96 oyuklu plakalara ayrıldı. ATG5'in hücre klonlarındaki ekspresyon seviyeleri western blot kullanılarak değerlendirildi. istatistiksel analiz


      Veriler ortalama ± standart sapma olarak ifade edilir (hata çubukları olarak gösterilir). Veriler Student t testi kullanılarak analiz edildi . Tüm istatistiksel analizler GraphPad Prism 8 yazılımı (CA, ABD) kullanılarak yapıldı. İmmünoblotlardaki protein bantlarının dansitometri analizi, ImageJ kullanılarak yapıldı. Farklar * P < 0.05, ** P < 0.01 ve *** P < 0.001'de anlamlı kabul edildi .

      Git: Sonuçlar

      Punicalagin, serviks kanseri hücrelerinin proliferasyonunu baskılar, kaspaz bağımlı hücre apoptozunu indükler ve karsinojenezi inhibe eder.


      Punicalagin'in HeLa ve SiHa hücrelerinin proliferasyonu üzerindeki etkisi incelendi. Da gösterildiği gibi1A, punikalagin doza ve zamana bağlı olarak HeLa ve SiHa hücrelerinin proliferasyonunu inhibe etti. Punicalagin'in HeLa ve SiHa hücrelerine karşı yarı maksimum inhibitör konsantrasyon değerleri, tedaviden 48 saat sonra sırasıyla 67 ve 40 uM idi. Bu, SiHa hücrelerinin punikalagin tedavisine oldukça duyarlı olduğunu gösterdi. Akış sitometrik analizi, 24 saat boyunca 140 veya 90 μM punicalagin ile tedavi edilen HeLa ve SiHa hücrelerinde apoptozun kontrol hücrelerindekinden sırasıyla yaklaşık 8.5 kat ve 6.3 kat daha yüksek olduğunu ortaya koydu (her ikisi de P < 0.001) (1B). Western blot sonuçları, punikalagin kaynaklı apoptozun kaspaza bağlı olduğunu gösterdi. CASP3, CASP7 ve CASP9'un ekspresyon seviyeleri aşağı regüle edilirken, bölünmüş CASP3, CASP7 ve CASP9'unkiler, 6, 12 veya 24 saat boyunca 140 μM punicalagin ile muamele edildikten sonra HeLa hücrelerinde yukarı regüle edildi (1C). Ayrıca, punikalagin ile tedavi üzerine HeLa ve SiHa hücrelerinde hücre kolonilerinin sayısı ve boyutu önemli ölçüde azaldı (1D).
      Şekil 1
      1
      Punicalagin'in (PUN) HeLa ve SiHa hücrelerinin çoğalması, apoptoz ve koloni oluşturma yeteneği üzerindeki etkisi. (A) HeLa ve SiHa hücreleri, 24, 48 veya 72 saat boyunca farklı dozlarda punikalagin ile tedavi edildi. Hücre canlılığı, hücre sayma kiti-8 kullanılarak değerlendirildi. (B) 24 saat boyunca 140 veya 90 μM PUN veya dimetil sülfoksit (DMSO) (kontrol) ile tedavi edilen hücrelerde apoptoz, akış sitometrisi kullanılarak analiz edildi. (C) 6, 12 veya 24 saat boyunca 140 μM PUN ile tedavi edilen HeLa hücrelerinde apoptozla ilişkili kaspaz proteinlerinin seviyeleri western blot kullanılarak incelendi. (D) 14 gün boyunca 15 veya 10 μM PUN ile muamele edilen HeLa ve SiHa hücreleri, kristal menekşe ile lekelendi. Kolonilerin temsili görüntüleri gösterilir. Değerler ortalama ± standart sapmayı temsil eder. Tüm deneyler üç kopya halinde gerçekleştirildi. * p<0.05, ** p<0.01. Punicalagin, HPV E6 ve E7 proteinlerinin lizozomal bozulmasını destekler


      Daha sonra, serviks kanseri hücrelerinin proliferasyonunu, apoptozunu ve karsinogenezini düzenleyen HPV'lerin iki ana onkoproteini olan E6 ve E7'ye punikalagin'in etkisi incelenmiştir. Da gösterildiği gibiİncir. 2A–B, punikalagin doza bağlı ve zamana bağlı olarak HeLa ve SiHa hücrelerinde E6 ve E7 seviyelerini aşağı regüle etti. Tutarlı bir şekilde, E6 ile ilgili hedeflenen proteinler STAT3 ve fosforile edilmiş STAT3'ün ekspresyon seviyeleri belirgin şekilde aşağı regüle edilirken, E7 hedefli protein Rb, punikalagin (140 uM) ile muamele edilmiş HeLa hücrelerinde belirgin şekilde yukarı regüle edildi (İncir. 2C). Bununla birlikte, 140 μM punikalagin ile tedavi, E6 / E7'nin mRNA seviyelerini aşağı regüle etmedi (Şekil S2). Bu, punikalagin'in transkripsiyonel seviyede E6 ve E7'nin ekspresyon seviyelerini düzenlemediğini gösterdi. E6 ve E7 proteininin stabilitesi, punikalagin (140 μM) ile muamele edilmiş HeLa hücrelerinde belirgin şekilde azaldı (İncir. 2D). Daha sonra, punikalagin'in E6 ve E7'nin bozulmasına aracılık ettiği yollar incelendi. HeLa hücreleri, 140 uM punikalagin ve MG 132 (bir proteazom inhibitörü) veya pepstatin A (bir proteaz inhibitörü)/E64d (bir lizozom inhibitörü) ile birlikte tedavi edildi. E64d ve pepstatin A ile birlikte tedavi, E6/E7 (İncir. 2E). Bu arada, MG 132, E7'nin punikalagin aracılı aşağı regülasyonunu kısmen hafifletti. 140 μM punicalagin ile tedavi, E7'nin ubiquitination seviyelerini etkilemedi ve HeLa hücrelerinde E6 ubiquitination'da orta derecede bir azalmaya yol açtı (İncir. 2F). Birlikte, bu veriler, lizozomal bozulmanın yanı sıra, proteazom bozulmasının, punikalagin aracılı E7 kaybında bir rolü olabileceğini göstermektedir.
      İncir. 2
      İncir. 2
      Punicalagin, lizozomal yol yoluyla E6 ve E7'nin bozulmasını destekler. (A ve B) HeLa veya SiHa hücreleri, 2, 4 ve 6 saat boyunca 140 veya 90 μM punikalagin ile (A) veya 6 saat boyunca belirtilen punikalagin konsantrasyonlarıyla (B) işlendi. Dimetil sülfoksit (DMSO) ile işlenen hücreler kontrol olarak görev yaptı. Toplam hücresel E6 veya E7 seviyeleri western blot kullanılarak belirlendi. (C) 6 saat boyunca 140 μM punikalagin veya DMSO (kontrol) ile tedavi edilen HeLa hücrelerinde E6 ile ilgili ve E7 ile ilgili proteinlerin seviyeleri western blot kullanılarak incelendi. (D) 50 μg/mL sikloheksimit (CHX) veya 1 saat boyunca 50 μg/mL CHX ve 2, 4 ve 6 saat boyunca 140 μM punicalagin kombinasyonu ile tedavi edilen HeLa hücrelerinde E6 ve E7 seviyeleri western kullanılarak incelendi. lekeleme. (E) 6 saat boyunca 140 μM punicalagin ile muamele edilmiş veya 1 saat boyunca 50 μM MG 132 veya 20 μM pepstatin A ve 20 μM E64d ile ön işleme tabi tutulmuş HeLa hücrelerinde E6 ve E7 seviyeleri, ardından 6 saat boyunca punikalagin ile muamele incelendi. western blot kullanarak. (F) HeLa hücreleri, 1 saat boyunca 50 uM MG 132 ile ön işleme tabi tutuldu, ardından 6 saat boyunca 140 uM punikalagin veya MG 132 ile muamele edildi. Hücreler parçalandı ve E6 veya E7, karşılık gelen antikorla immüno-çökeltildi. Ubikuitinile proteinlerin seviyeleri, western blotlama ile ubikuitin antikoru kullanılarak analiz edildi. Tüm deneyler üç kopya halinde gerçekleştirildi. ardından 6 saat boyunca 140 uM punikalagin veya MG 132 ile işleme tabi tutulur. Hücreler parçalandı ve E6 veya E7, karşılık gelen antikorla immüno-çökeltildi. Ubikuitinile proteinlerin seviyeleri, western blotlama ile ubikuitin antikoru kullanılarak analiz edildi. Tüm deneyler üç kopya halinde gerçekleştirildi. ardından 6 saat boyunca 140 uM punikalagin veya MG 132 ile işleme tabi tutulur. Hücreler parçalandı ve E6 veya E7, karşılık gelen antikorla immüno-çökeltildi. Ubikuitinile proteinlerin seviyeleri, western blotlama ile ubikuitin antikoru kullanılarak analiz edildi. Tüm deneyler üç kopya halinde gerçekleştirildi. Punicalagin, rahim ağzı kanseri hücrelerinde otofajiyi indükler


      E6 ve E7'nin punikalagin kaynaklı lizozomal bozunmasının altında yatan mekanizmaları aydınlatmak için, punikalagin'in HeLa ve SiHa hücrelerinde otofaji üzerindeki etkisi incelenmiştir. Bir otofaji belirteci olan mikrotübül ile ilişkili protein 1 hafif zincir 3'ün (LC3-II) ekspresyonu [24] punikalagin ile tedavi edilen hücrelerde analiz edildi. 140 veya 90 μM ile tedavi zamana bağlı olarak LC3-II seviyelerini yukarı regüle etti ve 6 saat boyunca punikalagin tedavisi ayrıca HeLa ve SiHa hücrelerinde LC3-II seviyelerinin doza bağlı bir şekilde yukarı regülasyonunu sergiledi (Şek. 3A–B). Daha sonra hücreler, LC3-II birikiminin artan otofagozom oluşumundan ve/veya otofagozom/lizozom füzyonunun inhibisyonundan kaynaklanıp kaynaklanmadığını belirlemek için bir otofagozom/lizozom füzyon inhibitörü olan klorokin ile tedavi edildi [25] . İşlenmemiş kontrol HeLa ve SiHa hücrelerindekilerle karşılaştırıldığında, punikalagin veya klorokin, LC3-II seviyesini belirgin şekilde yukarı regüle etti. Bu arada, punikalagin (140 veya 90 μM)/klorokin ile birlikte işleme tabi tutulan hücrelerdeki LC3-II seviyeleri, punikalagin (140 veya 90 μM) ile muamele edilmiş ve klorokin ile muamele edilmiş hücrelerdekilerle karşılaştırıldığında yukarı regüle edildi (Şek. 3C). Bu, punikalagin'in HeLa ve SiHa hücrelerinde otofajiyi indüklediğini gösterdi.
      Şek. 3
      Şek. 3
      Punicalagin'in otofajiye etkisi. (A–B) 2, 4 ve 6 saat boyunca 140 veya 90 μM punicalagin ile tedavi edilen HeLa veya SiHa hücrelerindeki LC3-I ve LC3-II seviyeleri (A) veya 6 saat boyunca belirtilen punikalagin konsantrasyonları (B) western blot yöntemiyle belirlendi. (C) 1 saat boyunca 100 uM klorokin ile ön işleme tabi tutulmuş HeLa veya SiHa hücrelerindeki LC3-I ve LC3-II seviyeleri, ardından 6 saat boyunca 140 veya 90 uM punikalagin ile muamele western blot kullanılarak incelendi. (D) HeLa hücreleri, 24 saat boyunca 200 enfeksiyonun çokluğunda AdPlus-mCherry-GFP-LC3B adenovirüs ile enfekte edildi, ardından 1 saat boyunca 100 nM bafilomisin A1 ile ön tedavi ve 24 saat boyunca 140 uM punicalagin ile tedavi edildi. Floresan görüntüler, bir konfokal floresan mikroskobu kullanılarak yakalandı. Kırmızı ve sarı LC3-II punkta, grup başına 100 hücrede kantitatif olarak analiz edildi ve sonuçlar, ortalama ± standart sapma olarak rapor edildi. (E) 2 saat boyunca 140 μM punicalagin ile muamele edilen HeLa hücreleri, bir transmisyon elektron mikroskobu altında incelendi. Temsili otofagozomlar ve otolizozomlar, sırasıyla kırmızı ve siyah oklarla gösterilir. **P <0.01. Tüm deneyler üç kez tekrarlandı.

      Ayrıca, punicalagin ile tedavi edilen HeLa hücrelerinde otofajik akışı değerlendirmek için bir tandem floresan prob etiketli adenovirüs sistemi (AdPlus-mCherry GFP-LC3II) kullanıldı (Şek. 3D). Kırmızı ve sarı punkta (mCherry ve GFP'den birleştirilmiştir) sırasıyla kaynaşmış otofagozom-lizozom ve kaynaşmamış otofagozomları gösterir. 24 saat boyunca 140 μM punicalagin ile muameleden sonra kırmızı ve sarı punkta sayısı sayıldı. Punicalagin ile tedavi edilen HeLa hücrelerindeki otofaji akışı, kontrol HeLa hücrelerindekinden daha yüksekti. Punicalagin ile tedavi edilen hücrelerdekiyle karşılaştırıldığında, hem lizozomal asitleşmeyi hem de otofagozom-lizozom füzyonunu inhibe eden punikalagin ve bafilomisin A1 ile birlikte tedavi edilen hücrelerde otofajik akış daha yüksekti [26] . İletim elektron mikroskobu analizi, otofagozomlar ve otolizozomlar hakkında doğrudan bilgiler sağladı. Punicalagin ile tedavi edilen HeLa hücrelerinde otofagozomların ve otolizozomların oluşumu, kontrol HeLa hücrelerindekinden daha yüksekti (Şek. 3E). Ek olarak, otofagozom oluşumunu engelleyen bir PIK3C3 (fosfatidilinositol 3-kinaz katalitik alt birim tip 3) inhibitörü olan 3-MA ile tedavi, punikalagin kaynaklı E6 ve E7 aşağı regülasyonunu hafifletti. 3-MA/punikalagin ile birlikte tedavi edilen HeLa ve SiHa hücrelerindeki E6 ve E7 seviyeleri, sırasıyla kontrol HeLa ve SiHa hücrelerindekilere benzerdi. Bu, punikalagin'in, otofajinin yukarı regülasyonu yoluyla E6 ve E7'nin bozulmasını desteklediğini gösterdi (Şekil S3). Punicalagin, ROS-JNK-BCL2 yolu yoluyla rahim ağzı kanseri hücrelerinde otofajiyi indükler


      Birkaç çalışma, punikalagin'in mitokondriyal disfonksiyonu desteklediğini ve sonuç olarak ROS üretimini desteklediğini göstermiştir [ 14 , 27 ]. Ek olarak, ROS aracılı PI3K/Akt/mTOR (fosfatidilinositol-4,5-bifosfat 3-kinaz katalitik alt birim beta, PI3K/serin/treonin kinaz, Akt/rapamisin kinazın mekanik hedefi, mTOR) yol aktivasyonu ve/veya aktivasyonu JNK (mitojenle aktive olan protein kinaz 8, MAPK8) yolu, ROS aracılı otofaji indüksiyonu için kritiktir [28] , [29] , [30] , [31] . Bu nedenle, punikalagin ile tedavi edilen rahim ağzı kanseri hücrelerinde ROS seviyeleri incelendi. Da gösterildiği gibiŞekil 4A, 140 μM punicalagin ile tedavi, HeLa hücrelerinde ROS seviyelerini yükseltti. mTOR yolu, otofajiyi negatif olarak düzenler [32] . Bu nedenle, punikalagin ile muamele edilmiş HeLa hücrelerinde mTOR ve fosforile edilmiş mTOR (p-mTOR) seviyeleri incelenmiştir. 140 μM punikalagin ile tedavi, mTOR ve p-mTOR seviyelerini belirgin şekilde etkilemedi (4B), punikalagin kaynaklı otofajinin mTOR yolunu içermediğini öne sürüyor. Toplam ve fosforile edilmiş JNK (p-JNK) seviyeleri, farklı süreler için 140 uM punikalagin ile muamele edilmiş HeLa hücrelerinde incelendi. Da gösterildiği gibi4B, punikalagin zamana bağlı olarak p-JNK seviyelerini yükseltti. JNK aracılı BCL2 (BCL2 apoptoz düzenleyici) fosforilasyonu, BCL2'nin BECN1'e (beclin 1SQ) bağlanmasını bozar. Bu süreç, hücresel otofaji ve apoptozun [33] , [34] , [35] düzenlenmesinde önemli bir rol oynar . Bu nedenle, punikalagin ile tedavi edilen HeLa hücrelerinde toplam ve fosforile edilmiş BCL2 (p-BCL2) seviyeleri incelenmiştir. Da gösterildiği gibi4C, 6 saat boyunca 140 μM punicalagin ile tedavi, p-BCL2 seviyelerini belirgin şekilde arttırdı, ancak BECN1'in bir başka önemli bağlanma ortağı olan fosforile edilmiş BECN1 (p-BECN1) ve PIK3C3 seviyelerini etkilemedi. SP100625 (JNK inhibitörü) ile tedavi, punikalagin kaynaklı p-BCL2 upregülasyonunu önemli ölçüde azalttı ve bu, bu indüksiyonun JNK'ye bağlı olduğunu gösterdi (4D). Da gösterildiği gibi4E–F, 140 μM punikalagin ile tedavi, HeLa hücrelerinde BCL2 ve BECN1 arasındaki etkileşimi belirgin şekilde inhibe etti. Bu sonuçlar, punikalagin'in ROS-JNK-BCL2 yolunu aktive ettiğini ve BCL2-BECN1 kompleksinin ayrışmasını ve ardından otofajinin aktivasyonunu desteklediğini göstermektedir.
      Şekil 4
      4
      Punicalagin, BCL2 fosforilasyonunu ve sonuç olarak BCL2-BECN1 kompleksinin ROS-JNK yolu yoluyla ayrışmasını teşvik eder. (A) 4 saat boyunca 140 μM punikalagin veya dimetil sülfoksit (DMSO; kontrol) ve 10 mM N-asetil-L-sistein (NAC) ile muamele edilen HeLa hücreleri, 10 μM 2′,7′-diklorofloresan diasetat ile boyandı ve tabi tutuldu akış sitometrik analiz. (B) 2, 4 veya 6 saat boyunca 140 μM punikalagin ile tedavi edilen HeLa hücrelerinde mTOR, fosforile edilmiş mTOR (p-mTOR), JNK ve fosforile edilmiş JNK (p-JNK) seviyeleri western blot kullanılarak tespit edildi. (C) B'de olduğu gibi tedavi edilen HeLa hücrelerinde fosforile edilmiş ve toplam BECN1, BCL2 ve toplam PIK3C3 seviyeleri western blot kullanılarak belirlendi. (D) 140 μM punicalagin veya DMSO (kontrol) ile tedavi edilen HeLa hücrelerindeki p-BCL2 seviyeleri veya 1 saat boyunca 20 μM SP600125 tedavisi ve 6 saat punikalagin tedavisinin kombinasyonu western blot kullanılarak tespit edildi. (E ve F) 6 saat boyunca 140 uM punikalagin veya DMSO (kontrol) ile muamele edilen HeLa hücrelerinin lizatları, anti-BECN1 (E) veya anti-BCL2 (F) antikorları ile immünopresipitasyona tabi tutuldu. Ek olarak, immünopresipitattaki BECN1 ve BCL2 seviyeleri western blot kullanılarak analiz edildi. Tüm deneyler üç kez tekrarlandı. immünopresipitattaki BECN1 ve BCL2 seviyeleri western blot kullanılarak analiz edildi. Tüm deneyler üç kez tekrarlandı. immünopresipitattaki BECN1 ve BCL2 seviyeleri western blot kullanılarak analiz edildi. Tüm deneyler üç kez tekrarlandı. JNK aracılı otofaji, E6 ve E7 proteinlerinin punikalagin aracılı bozulmasında rol oynar


      Punicalagin kaynaklı JNK yolunun otofajik E6/E7 bozulmasındaki rolünü değerlendirmek için HeLa hücreleri punikalagin ve NAC (ROS temizleyici), SP100625 veya 3-MA ile birlikte tedavi edildi. Da gösterildiği gibiŞekil 5A, punikalagin (140 uM) ve NAC, SP100625 veya 3-MA ile 6 saat boyunca birlikte tedavi edilen hücrelerdeki E6 ve E7 seviyeleri, kontrol hücrelerindekilere benzerdi. E6 protein seviyeleri için ve kısmen E7 protein seviyeleri için , siRNA (Şekil 5B).
      Şekil 5
      Şekil 5
      E6 ve E7'nin punikalagin aracılı bozulmasında JNK yolunun neden olduğu otofajinin rolü. (A) 140 uM punikalagin veya dimetil sülfoksit (DMSO; kontrol) ile işleme tabi tutulmuş veya N-asetil-L-sistein (NAC; 10 mM), 3-MA (5 mM) veya SP600125 ile ön işleme tabi tutulmuş HeLa hücrelerindeki E6 ve E7 seviyeleri (20 uM) 1 saat, ardından 6 saat punikalagin ile tedavi western blot kullanılarak değerlendirildi. (B) HeLa hücreleri, JNK veya kontrol siRNA'ya karşı 100 nM kısa enterferans yapan RNA (siRNA) ile transfekte edildi. Transfeksiyondan 48 saat sonra, hücreler 6 saat boyunca 140 uM punikalagin ile muamele edildi. E6 ve E7 protein seviyeleri ve JNK yıkım etkinliği western blot kullanılarak analiz edildi. (C–E) Yabani tip (WT) ve ATG5'teki ATG5 seviyelerinakavt (KO) HeLa hücreleri western blot (C) kullanılarak incelendi. 6 saat boyunca 140 uM punicalagin ile muamele edilmiş WT ve ATG5 KO hücrelerinde LC3-II (D), E6 ve E7 (E) seviyeleri western blot kullanılarak analiz edildi. Tüm deneyler üç kez tekrarlandı.

      ATG5 (gen ID: 9474), LC3-I'in LC3-II'ye dönüşümünü teşvik ederek otofagozom oluşumunda hayati bir rol oynar [ 36 , 37 ]. Daha sonra, punikalagin aracılı E6/E7 bozulmasında otofajinin rolü incelendi. ATG5 nakavt HeLa hücre hattı, CRISPR/Cas9 sistemi kullanılarak oluşturulmuştur (Şekil 5C). Vahşi tip (WT) ve ATG5 nakavt HeLa hücreleri, 6 saat boyunca 140 uM punikalagin ile işlendi. ATG5'in devre dışı bırakılması , HeLa hücrelerinde LC3-I'in LC3-II'ye dönüşümünü engelledi (Şekil 5D). Punicalagin ile tedavi edilen WT hücrelerindeki E6 ve E7 seviyeleri, kontrol hücreleri ve punikalagin ile tedavi edilen ATG5 nakavt hücrelerindekilerle karşılaştırıldığında belirgin şekilde aşağı regüle edildi (Şekil 5E). ATG5 nakavt, E6 ve E7 seviyelerini hafifçe artırdı. Bu, bazal otofaji seviyelerinin E6 ve E7 proteinlerinin bozulmasında rol oynayabileceğini gösterdi. Punicalagin, E6 / E7 seviyelerini düşürür ve in vivo servikal tümör büyümesini baskılar


      Son olarak, HeLa hücreli ksenograft çıplak fare modelinde punikalajinin terapötik etkinliği incelendi. İn vitro sonuçlarla tutarlı olarak , punicalagin (20 mg/kg vücut ağırlığı) ile tedavi edilen gruptaki tümör büyümesi, PBS ile tedavi edilen gruptakinden önemli ölçüde daha yavaştı (P < 0.05) (Şekil 6A–B). Ek olarak, punikalagin (20 mg/kg vücut ağırlığı) ile tedavi edilen gruptaki tümör ağırlığı, PBS ile tedavi edilen gruba kıyasla yaklaşık %32.7 oranında önemli ölçüde azaldı (P < 0.05). Punicalagin ile tedavi edilen grupta E6 ve E7'nin aşağı regülasyonu western blot kullanılarak doğrulandı (Şekil 6C) ve immünohistokimyasal analizler (Şekil 6D). PBS ile tedavi edilen gruptakilerle karşılaştırıldığında, punikalagin (20 mg/kg vücut ağırlığı) ile tedavi edilen grupta LC3-II ve bölünmüş CASP3 (apoptozla ilişkili proteinler) seviyeleri yukarı doğru düzenlenmiştir (Şekil 6C). Ek olarak, punikalagin ile tedavi edilen grupta ve PBS ile tedavi edilen grupta inflamatuar hücrelerin artan infiltrasyonu gözlendi (Şekil 6D).
      Şekil 6
      Şekil 6
      Punicalagin'in servikal tümörlere karşı terapötik etkinliği. 5 mm çapında HeLa hücre ksenograft tümörü olan BALB/c-nu/nu farelerine, iki günde bir punikalagin (20 mg/kg vücut ağırlığı) veya fosfat tamponlu salin (PBS) (kontrol) enjekte edildi. (A) Tümör çapı 18 gün boyunca iki günde bir ölçülmüştür. (B) İki gruptaki tümör ağırlığı ölçüldü (üst panel) ve tümörlerin temsili görüntüleri, tüm fareler öldürüldüğünde (düşük panel) 18. günde yakalandı. (C) Tümör dokularındaki E6, E7, LC3-II ve bölünmüş CASP3 seviyeleri western blot kullanılarak incelendi. (D) Hematoksilen ve eozin ile boyanmış tümör bölümlerinin temsili görüntüleri ve enflamatuar hücrelerin tümör infiltrasyonu, siyah oklar ve E6 ve E7'nin immünohistokimyasal analizi ile belirtilmiştir. * p<0.05. Veriler, ortalama ± standart sapma (6 fare/grup) olarak ifade edilir. Deneyler, benzer sonuçlarla iki kez yapıldı.

      Git: Tartışma


      HPV ile enfekte olmuş rahim ağzı kanseri hücrelerinin habis fenotipi esas olarak E6 ve E7 tarafından korunur. Bu çalışmada, punikalagin, otofaji lizozom sistemi aracılığıyla rahim ağzı kanseri hücrelerinde E6 ve E7 seviyelerini zamana ve doza bağlı olarak aşağı regüle etti. Bununla birlikte, proteazom yolunun, E6 ve E7'nin punikalagin aracılı düzenlemesindeki rolü tamamen göz ardı edilemez çünkü proteazom inhibitörü MG 132 ile tedavi, E7'nin punikalagin aracılı aşağı regülasyonunu kısmen hafifletmiştir. Otofaji-lizozom yolu, otofaji ve lizozom inhibitörleri, E6 ve E7'nin punikalagin kaynaklı aşağı regülasyonunu neredeyse tamamen inhibe ettiğinden, E6 ve E7 seviyelerinin düzenlenmesine büyük ölçüde katkıda bulunmuştur. Daha fazla araştırma, punikalajinin ROS-JNK yolunu aktive ettiğini ve NAC (ROS süpürücü) ve SP600125 (JNK inhibitörü) ile tedavinin, punikalagin kaynaklı E6 ve E7 seviyelerinin aşağı regülasyonunu azalttığını ortaya koydu. Bu, ROS-JNK yolunun E6 ve E7'nin bozulmasında rol oynadığını gösterdi. Aktifleştirilmiş JNK, BECN1 / BCL2 kompleksinin ayrışmasına ve otofajik fagofor montajı ve otofajiyi indüklemek için aksesuar proteinlerin alınması için önemli olan BECN1-PIK3C3 kompleksinin oluşumuna yol açan BCL2 fosforilasyonunu teşvik etti. Birlikte immünopresipitasyonun sonuçları ve Bu, BECN1/BCL2 kompleksinin ayrışmasına ve otofajik fagofor montajı ve otofajiyi indüklemek için aksesuar proteinlerin işe alınması için önemli olan BECN1-PIK3C3 kompleksinin oluşumuna yol açtı. Birlikte immünopresipitasyonun sonuçları ve Bu, BECN1/BCL2 kompleksinin ayrışmasına ve otofajik fagofor montajı ve otofajiyi indüklemek için aksesuar proteinlerin işe alınması için önemli olan BECN1-PIK3C3 kompleksinin oluşumuna yol açtı. Birlikte immünopresipitasyonun sonuçları veATG5 nakavt deneyleri, punicalagin'in BECN1-BCL2 kompleksinin ayrışmasını desteklediği ve otofajiyi desteklediği hipotezimizi doğruladı. Da gösterildiği gibiŞekil 7, punikalagin aracılı E6/E7 bozulması büyük ölçüde otofajiye bağlıydı. Bu model, HPV pozitif rahim ağzı kanseri hücrelerinde iki onkoprotein E6 ve E7'nin otofaji kaynaklı bozunması için yeni bir mekanizma sağladı.
      Şekil 7
      7
      E6 ve E7'nin punikalagin kaynaklı otofajik bozulmasında yer alan yolların şeması. İnsan papilloma virüsü (HPV) ile enfekte olmuş rahim ağzı kanseri hücrelerinde, BCL2'nin BECN1'e bağlanması, membran oluşumu için otofagozom çekirdeklenmesini düzenleyen PIK3C3 kompleksinin diğer bileşenleri ile etkileşimini bloke eder. Punicalagin ile tedavi, JNK'nin aktivasyonuna ve fosforilasyonuna yol açan reaktif oksijen türlerinin (ROS) üretimini teşvik eder. Aktive JNK, BCL2'yi doğrudan fosforile eder. Fosforillenmiş BCL2, BECN1/BCL2 kompleksinin ayrışmasını destekler. BECN1, PIK3C3 kompleksine bağlanır ve otofajiyi başlatır. Hızlandırılmış otofagozom oluşumu ve otofagozom-lizozom füzyonu, E6 ve E7 hedeflerinin lizozomal bozulmasına yol açar.

      Seçici otofajinin bir bağdaştırıcısı olan SQSTM1/p62 (sekestozom 1), ubikitinlenmiş proteinlerle etkileşime girer ve bozunma için onları otofagozoma taşır. Bu işlem sırasında SQSTM1/p62 de bozulmaya uğrar. Punicalagin ile tedavi, SQSTM1/p62 düzeylerini etkilemedi (Şekil S4). Bununla birlikte, SQSTM1/p62 ile indüklenen seçici otofajiyi teşvik eden punikalagin olasılığı göz ardı edilemez. SQSTM1/p62 seviyeleri, ROS maruziyetinden sonra NRF2 (nükleer faktör, eritroid 2 benzeri 2) gibi diğer faktörlerden etkilenebilir [38]. Otofaji indüksiyonu, SQSTM1/p62 seviyelerinde ince değişikliklere neden olabilir. Bu nedenle, SQSTM1/p62 seviyeleri birden fazla düzenleyici tarafından düzenlenebilir. Punicalagin'in serviks kanserinde seçici veya seçici olmayan otofajiyi indüklemedeki rolü bu çalışmada tam olarak belirlenmemiştir. Punicalagin'in otofajik yolun spesifik veya genelleştirilmiş mekanizmaları yoluyla E6 ve E7'nin bozulmasına neden olup olmadığı daha fazla araştırmayı beklemektedir.

      Otofaji çeşitli yollarla indüklenebilir. AMP ile aktive olan protein kinaz (AMPK) ve mTOR, otofaji ile ilgili birkaç yolu düzenler. Punicalagin, HeLa hücrelerinde AMPK fosforilasyonunu yukarı regüle etti (Şekil S4). Bu, punikalajinin AMPK düzeylerini yükselttiğini bildiren önceki bir çalışmanın sonuçlarıyla tutarlıdır [20] . Ancak, punikalagin mTOR ve p-mTOR düzeylerini etkilememiştir (Şekil 4B) Gelecekteki çalışmalarda araştırılmalıdır.

      Birkaç çalışma, otofajinin, HPV dahil olmak üzere patojenlere karşı bir konak savunma mekanizması olduğunu göstermektedir. HPV'lerin bu koruyucu sistemi etkisiz hale getirdiği ve replikasyonlarını kolaylaştırmak için hücresel otofajiden yararlandığı ve bu da rahim ağzı kanseri ilerlemesine önemli ölçüde katkıda bulunduğu bildirilmektedir. Griffin ve ark . tip 16 HPV psödovirionunun birincil insan keratinositlerini enfekte etme yeteneğinin, yerleşik keratinosit hücre dizilerini enfekte etme yeteneği ile karşılaştırıldığında sınırlı olduğunu bildirdi. Bu, yerleşik keratinosit hücre hatlarında azalmış bazal otofaji seviyelerine bağlanabilir. Otofaji ile ilgili genlerin yıkılması veya bir otofaji inhibitörü ile tedavi, virionların enfektivitesini arttırır [ 39 , 40 ]]. Başarılı bir enfeksiyon oluşturmak için HPV, konak otofajisini inhibe etmek için çeşitli stratejiler kullanır. E6 ve E7, Akt/mTOR yolunu modüle ederek otofajiyi inhibe edebilir [ 41 , 42 ]. Tersine, E6 ve E7'nin tükenmesi, bir servikal karsinom modelinde otofajiye neden olur. Bu, otofaji ve HPV'nin ters orantılı olduğunu ileri sürdü. Servikal karsinogenez, tehlikeye atılmış otofaji ve başarılı HPV istilasından kaynaklanır. Son zamanlarda, rahim ağzı kanserinde otofajinin klinik önemi bilim camiasının ilgisini çekmiştir. BECN1 ve LC3-II'nin aşağı regülasyonu, servikal kanserli hastalarda zayıf sağkalım ile ilişkilidir [43] , [44] , [45] , [46] , [47]. Otofaji, özellikle tümörigenezin erken evrelerinde tümör başlangıcını, çoğalmasını, istilasını ve gelişimini inhibe ederek bir tümör baskılayıcı mekanizma olarak işlev görebilir [48] , [49] , [50] . Bununla birlikte, tümör ilerlemesinin geç aşamasında, otofaji, tümör hücrelerinin patogenezinin yanı sıra tümör büyümesi, istilası ve metastazı da teşvik edebilir [51] , [52] , [53] , [54] , [55]. Klorokin, 3-MA, bafilomisin A1, LY294002, SB202190 ve SB203580 dahil olmak üzere çeşitli otofaji inhibitörleri, tümörlere karşı büyümeyi inhibe edici etkiler gösterir. Bu inhibitörler esas olarak fagoforun çekirdeklenmesini ve uzamasını hedefler veya endozomal-lizozomal asitleşme sürecini inhibe eder. Ek olarak, otofajiyi inhibe etmek veya aktive etmek için çeşitli doğal bileşikler geliştirilmiştir. Artemisinin, dihidroartemisinin, kurkumin ve resveratrol gibi doğal bileşikler, otofaji ile ilgili farklı yolları veya proteinleri modüle ederek otofaji olarak rapor edilir [56] , [57] , [58] , [59]. Bu çalışmanın bulguları, punikalagin'in, E6 ve E7'nin otofaji aracılı bozulmasını verimli bir şekilde indüklediğini ve rahim ağzı kanserini hem in vitro hem de in vivo inhibe ettiğini göstermiştir . Ek olarak, punikalagin tedavisi altında tümör hücresi otofajisi ve apoptozun indüklenmesi ve ayrıca tümörlerde inflamatuar hücrelerin artan infiltrasyonu da gözlendi. Rahim ağzı kanseri için yeni terapötik stratejiler geliştirmek için kullanılabilir.

      Sonuç olarak, bu çalışma, E6 ve E7'nin punikalagin kaynaklı otofajik bozulmasının altında yatan mekanizmaya yeni bir bakış açısı sağlamıştır. Punicalagin, ROS-JNK-BCL2 yolunu aktive ederek rahim ağzı kanserinde otofajiyi teşvik etti ve BECN1'in BCL2'den salınmasını teşvik etti. Punicalagin'in serviks kanserine karşı büyümeyi inhibe edici etkileri hem in vitro hem de in vivo olarak doğrulanmıştır . Bu nedenle, bu bulgular HPV ile enfekte servikal kanserli hastalar için yeni bir terapötik stratejinin geliştirilmesine olanak sağlayacaktır.

      Git: Yazar katkıları


      Deneyleri tasarladı: XLX, CFL, HAA ve SDM; Deneyleri gerçekleştirdi: XLX, LYH, LLL ve JRW; Verileri analiz etti: XLX ve CFL; Makaleyi hazırladı: XLX, CFL ve SDM. Tüm yazarlar sonuçları tartıştı ve makaleye eleştirel bir şekilde yorum yaptı.

      Git: etik beyan


      Fare çalışmaları, Çin Bilimler Akademisi Araştırma Etik Kurulu, Mikrobiyoloji Enstitüsü'nün düzenlemelerine göre yapıldı. Çalışma protokolü Araştırma Etik Kurulu tarafından onaylanmıştır (izin numarası PZIMCAS2011001). Tüm hayvan deneyleri, Laboratuar Hayvanlarının İşlenmesine İlişkin Kurumsal Yönergelere göre yapıldı.

      Git: Finansman bilgileri


      Bu çalışma, Çin Bilimler Akademisi'nin Stratejik Öncelikli Araştırma Programı (XDB29040000), Çin Bilimler Akademisi'nin Tek Kuşak ve Tek Yol Uluslararası Bilim ve Teknoloji İşbirliği (153211KYSB20170001), Foshan'dan Endüstriyel Yenilik Ekibi hibesi ile desteklenmiştir. Endüstriyel Teknoloji Araştırma Enstitüsü, Çin Bilimler Akademisi ve Çin Ulusal Doğa Bilimleri Vakfı'ndan sağlanan hibeler (32070163, 81761128002, 81871297).

      Git: Rakip Çıkar Beyanı


      Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.

      Git: teşekkür


      Profesör Cuihua Liu'ya (Patojenik Mikrobiyoloji ve İmmünoloji Ana Laboratuvarı, Çin Mikrobiyoloji Enstitüsü, Çin Bilimler Akademisi) pSpCas9 (BB)-2A-GFP plazmidini (Patojenik Mikrobiyoloji ve İmmünoloji Anahtar Laboratuvarı, Çin Enstitüsü) sağladığı için minnettarız. Mikrobiyoloji, Çin Bilimler Akademisi) akış sitometrisi ve konfokal mikroskopi konusundaki teknik yardımlarından dolayı. Ek olarak, elektron mikroskobu için numune hazırlama ve görüntü alma konusundaki teknik yardımları için Zhongshuang Lv, Xueke Tan ve Xixia Li'ye (Biyolojik Görüntüleme Merkezi, Biyofizik Enstitüsü, Çin Bilimler Akademisi) teşekkür ederiz. Editage'e teşekkür ederiz ( www.editage.com) İngilizce dil düzenleme için. Bu çalışma, Çin Bilimler Akademisi'nin Stratejik Öncelikli Araştırma Programı (XDB29040000), Çin Bilimler Akademisi'nin Tek Kuşak ve Tek Yol Uluslararası Bilim ve Teknoloji İşbirliği (153211KYSB20170001), Foshan'dan Endüstriyel Yenilik Ekibi hibesi ile desteklenmiştir. Endüstriyel Teknoloji Araştırma Enstitüsü, Çin Bilimler Akademisi ve Çin Ulusal Doğa Bilimleri Vakfı'ndan sağlanan hibeler (32070163, 81761128002, 81871297).

      Git: Dipnotlar


      Bu makaleyle ilgili ek materyal, çevrimiçi sürümde doi: 10.1016/j.tranon.2022.101388 adresinde bulunabilir .


      Git: Ek. tamamlayıcı malzemeler


      Görmek için buraya tıkla. (142K, pdf) Resim, uygulama 1

      Görmek için buraya tıkla. (624K, docx) Resim, uygulama 2

      Görmek için buraya tıkla. (374K, pdf) Resim, uygulama 3

      Görmek için buraya tıkla. (18K, docx) Resim, uygulama 4

      Görmek için buraya tıkla. (13K, docx) Resim, uygulama 5

      Görmek için buraya tıkla. (24K, docx) Resim, uygulama 6

      Görmek için buraya tıkla. (964K, pdf) Resim, uygulama 7

      Görmek için buraya tıkla. (379K, pdf) Resim, uygulama 8

      Görmek için buraya tıkla. (18K, docx) Resim, uygulama 9

      Görmek için buraya tıkla. (916K, pdf) Resim, uygulama 10

      Görmek için buraya tıkla. (959K, pdf) Resim, uygulama 11


      Git: Referanslar

      1.de Sanjose S., Quint WGV, Alemany L., Geraets DT, Klaustermeier JE, Lloveras B., Tous S., Felix A., Bravo LE, Shin H.-R., Vallejos CS, de Ruiz PA, Lima MA, Guimera N., Clavero O., Alejo M., Llombart-Bosch A., Cheng-Yang C., Tatti SA, Kasamatsu E., Iljazovic E., Odida M., Prado R., Seoud M., Grce M. , Usubutun A., Jain A., Suarez GAH, Lombardi LE, Banjo A., Menéndez C., Domingo EJ, Velasco J., Nessa A., Chichareon SCB, Qiao YL, Lerma E., Garland SM, Sasagawa T. , Ferrera A., Hammouda D., Mariani L., Pelayo A., Steiner I., Oliva E., Meijer CJLM, Al-Jassar WF, Cruz E., Wright TC, Puras A., Llave CL, Tzardi M. , Agorastos T., Garcia-Barriola V., Clavel C., Ordi J., Andújar M., Castellsagué X., Sánchez GI, Nowakowski AM, Bornstein J., Muñoz N., Bosch FXİnvaziv rahim ağzı kanserinde insan papilloma virüsü genotip atfı: dünya çapında retrospektif bir kesitsel çalışma.Lancet Oncol. 2010; 11 :1048-1056. [ PubMed ] [ Google Akademik ]
      2. Hoppe-Seyler K., Bossler F., Braun JA, Herrmann AL, Hoppe-Seyler F. HPV E6/E7 onkogenleri: viral karsinogenez ve terapötik hedefler için anahtar faktörler. Trendler Mikrobiyol. 2018; 26 :158–168. [ PubMed ] [ Google Akademik ]
      3. van den Heuvel S., Dyson NJ pRB ve E2F ailelerinin korunan fonksiyonları. Nat. Rev. Mol. Hücre Biol. 2008; 9 :713–724. [ PubMed ] [ Google Akademik ]
      4. Morgan EL, Wasson CW, Hanson L., Kealy D., Pentland I., McGuire V., Scarpini C., Coleman N., Arthur JSC, Parish JL, Roberts S., Macdonald A. E6 tarafından STAT3 aktivasyonu farklılaşmaya bağlı HPV18 yaşam döngüsü için gereklidir. PLoS Patog'u. 2018; 14 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      5. Salon AH, Alexander KA İnsan papilloma virüsü tip 18 E6 ve E7'nin RNA etkileşimi, HeLa hücrelerinde yaşlanmaya neden olur. J. Virol. 2003; 77 :6066–6069. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      6. Ramirez J., Poirson J., Foltz C., Chebaro Y., Schrapp M., Meyer A., ​​Bonetta A., Forster A., ​​Jacob Y., Masson M., Deryckere F., Trave G. Targeting yüksek afiniteli iki değerli bir ligand ile HPV E6 onkoproteininin iki onkojenik fonksiyonel bölgesi. Ange. Kimya Int. Ed Engl. 2015; 54 :7958-7962. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      7. Sterlinko Grm H., Weber M., Elston R., McIntosh P., Griffin H., Banks L., Doorbar J. Yeni bloke edici peptitler tarafından hücresel substratlarının E6 ile indüklenen bozulmasının inhibisyonu. J. Mol. Biol. 2004; 335 :971–985. [ PubMed ] [ Google Akademik ]
      8. Jing K., Shin S., Jeong S., Kim S., Song KS, Park JH, Heo JY, Seo KS, Park SK, Kweon GR, Wu T., Park JI, Lim K. Dokosaheksaenoik asit ubikuitin-proteazom sistemini aktive ederek HPV E6/E7 onkoproteinlerinin bozulması. Hücre ölümü. Dis. 2014; 5 :e1524. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      9. Zhang W., Che Q., Tan H., Qi X., Li J., Li D., Gu Q., Zhu T., Liu M. Marine Streptomyces sp. türetilmiş antimisin analogları, ROS'a bağlı ubikuitin-proteazom sisteminin aracılık ettiği HPV E6/E7 tükenmesi yoluyla HeLa hücrelerini baskılar. bilim 2017 ; 7 :42180. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      10. Kulkarni AP, Mahal HS, Kapoor S., Aradhya SM Punicalagin'in bağlanma, antioksidan ve sitotoksik etkileri üzerine in vitro çalışmalar. J. Agric. Gıda Kimyası 2007; 55 :1491–1500. [ PubMed ] [ Google Akademik ]
      11. Cao Y., Chen J., Ren G., Zhang Y., Tan X., Yang L. Punicalagin, foxo3a/otofaji sinyal yolunu inhibe ederek LPS ile indüklenen RAW264.7 makrofajlarında iltihabı önler. Besinler. 2019; 11 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      12. Liu C., Cai D., Zhang L., Tang W., Yan R., Guo H., Chen X. Hidrolize edilebilir tanenlerin (punicalagin, punicalin ve geraniin) hepatit B virüsünün kovalent olarak kapalı dairesel inhibitörleri olarak tanımlanması DNA. Antiviral Arş. 2016; 134 :97-107. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      13. Larrosa M., Tomas-Barberan FA, Espin JC Diyette hidrolize olabilen tanen punikalagin, mitokondriyal yolu kullanarak insan kolon adenokarsinomu Caco-2 hücrelerinde apoptozu indükleyen ellagik asidi serbest bırakır. J. Nutr. Biyokimya. 2006; 17 :611–625. [ PubMed ] [ Google Akademik ]
      14. Berkoz M., Krosniak M. Punicalagin, A549 hücre hattında mitokondri aracılı yol ile apoptozu indükler. Gen. Physiol. Biyofiz. 2020; 39 :557-567. [ PubMed ] [ Google Akademik ]
      15. Zhang L., Chinnathambi A., Alharbi SA, Veeraraghavan VP, Mohan SK, Zhang G. Punicalagin, mitokondriyal yol aracılığıyla ve NF-kB sinyal yolunu inhibe ederek insan rahim ağzı kanseri (ME-180) hücrelerinde apoptozu destekler. Suudi J. Biol. bilim 2020; 27 :1100–1106. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      16. Tang J., Li B., Hong S., Liu C., Min J., Hu M., Li Y., Liu Y., Hong L. Punicalagin, servikal kanser hücrelerinin çoğalmasını ve istilasını baskılar. beta-katenin yolu. Mol. Med. 2017 ; 16 :1439–1444. [ PubMed ] [ Google Akademik ]
      17. Pan L., Duan Y., Ma F., Lou L. Punicalagin, meme kanseri hücrelerinde GOLPH3'ü düzenleyerek canlılığı, göçü, istilayı ve EMT'yi engeller. J. Recep. Sinyal İletimi. Araş. 2020; 40 :173–180. [ PubMed ] [ Google Akademik ]
      18. Tang JM, Min J., Li BS, Hong SS, Liu C., Hu M., Li Y., Yang J., Hong L. Punicalagin'in beta-katenin sinyal inhibisyonu ile birlikte yumurtalık karsinomu hücrelerine karşı terapötik etkileri . Int. J. Gynecol. Kanser. 2016; 26 :1557–1563. [ PubMed ] [ Google Akademik ]
      19. Li J., Wang G., Hou C., Li J., Luo Y., Li B. Nar kabuğundan elde edilen punicalagin ve ellagik asit, apoptozu indükler ve mitokondriyi hedefleyerek insan HepG2 hepatoma hücrelerinde proliferasyonu engeller. Gıda Tarımı. immünol. 2019; 30 :897-912. [ Google Akademik ]
      20. Wang SG, Huang MH, Li JH, Lai FI, Lee HM, Hsu YN Punikalagin, insan U87MG glioma hücrelerinde apoptotik ve otofajik hücre ölümünü indükler. Acta Pharmacol. Günah. 2013; 34 :1411–1419. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      21. Xu X., Guo Y., Zhao J., He S., Wang Y., Lin Y., Wang N., Liu Q. Bir PTP1B inhibitörü olan Punicalagin, HO-'nin yukarı regülasyonu yoluyla M2c fenotip polarizasyonunu indükler. 1 murin makrofajlarında. Ücretsiz Radic. Biol. Med. 2017; 110 :408–420. [ PubMed ] [ Google Akademik ]
      22. Lee SI, Kim BS, Kim KS, Lee S., Shin KS, Lim JS NFAT aktivasyonunun inhibisyonu yoluyla punicalagin'in immün baskılayıcı aktivitesi. Biyokimya. Biyofiz. Araş. Komün. 2008; 371 :799-803. [ PubMed ] [ Google Akademik ]
      23. Li P., Du R., Chen Z., Wang Y., Zhan P., Liu X., Kang D., Chen Z., Zhao X., Wang L., Rong L., Cui Q. Punicalagin influenza virüslerinin bir nöraminidaz inhibitörüdür. J. Med. Virol. 2020 [ PubMed ] [ Google Akademik ]
      24. Rubinsztein DC, Cuervo AM, Ravikumar B., Sarkar S., Korolchuk V., Kaushik S., Klionsky DJ Bir "otofagometre" arayışında. Otofaji. 2009; 5 :585–589. [ PubMed ] [ Google Akademik ]
      25. Mauthe M., Orhon I., Rocchi C., Zhou X., Luhr M., Hijlkema KJ, Coppes RP, Engedal N., Mari M., Reggiori F. Chloroquine, otofagozom-lizozom füzyonunu azaltarak otofajik akışı engeller. Otofaji. 2018; 14 :1435–1455. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      26. Mauvezin C., Neufeld TP Bafilomisin A1, hem V-ATPase'ye bağlı asitleşmeyi hem de Ca-P60A/SERCA'ya bağlı otofagozom-lizozom füzyonunu inhibe ederek otofajik akışı bozar. Otofaji. 2015; 11 :1437–1438. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      27. Fang L., Wang H., Zhang J., Fang X. Punicalagin, akciğer kanseri A549 hücrelerinde STAT3 translokasyonunu inhibe ederek ROS aracılı apoptotik hücre ölümünü indükler. J. Biochem. Mol. Toksikol. 2021:e22771. [ PubMed ] [ Google Akademik ]
      28. Li HY, Zhang J., Sun LL, Li BH, Gao HL, Xie T., Zhang N., Ye ZM Celastrol, insan osteosarkom hücrelerinde ROS/JNK sinyal yolu aracılığıyla apoptozu ve otofajiyi indükler: in vitro ve in vitro canlı çalışma. Hücre ölümü. Dis. 2015; 6 :e1604. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      29. Poillet-Perez L., Despouy G., Delage-Mourroux R., Boyer-Guittaut M. Tümör başlangıcından kanser tedavisine kadar kanser hücrelerinde ROS ve otofaji arasındaki etkileşim. Redoks. Biol. 2015; 4 :184-192. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      30. Guo C., Yang M., Jing L., Wang J., Yu Y., Li Y., Duan J., Zhou X., Li Y., Sun Z. Amorf silika nanopartiküller, vasküler endotelyal hücre hasarını tetikler. reaktif oksijen türlerinin aracılık ettiği MAPK/Bcl-2 ve PI3K/Akt/mTOR sinyalleri yoluyla apoptoz ve otofaji. Int. J. Nanomed. 2016; 11 :5257-5276. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      31. Sun XL, Zhang XW, Zhai HJ, Zhang D., Ma SY Magnoflorine, ROS tarafından düzenlenen JNK aktivasyonu ile otofaji, apoptoz ve hücre döngüsü durdurmasını indükleyerek insan mide kanseri ilerlemesini engeller. Biyomedikal. Eczacı. 2020; 125 [ PubMed ] [ Google Akademik ]
      32. Jung CH, Ro SH, Cao J., Otto NM, Kim DH mTOR otofajinin düzenlenmesi. FEBS Lett. 2010; 584 :1287–1295. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      33. Wei Y., Pattingre S., Sinha S., Bassik M., Levine B. Bcl-2'nin JNK1 aracılı fosforilasyonu, açlığın neden olduğu otofajiyi düzenler. Mol. Hücre. 2008; 30 :678–688. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      34. Vega-Rubin-de-Celis S. Beclin 1-bağımlı otofajinin kanserdeki rolü. Biyoloji (Basel) 2019; 9 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      35. Pattingre S., Tassa A., Qu X., Garuti R., Liang XH, Mizushima N., Packer M., Schneider MD, Levine B. Bcl-2 antiapoptotik proteinler, Beclin 1-bağımlı otofajiyi inhibe eder. Hücre. 2005; 122 :927-939. [ PubMed ] [ Google Akademik ]
      36. Hanada T., Noda NN, Satomi Y., Ichimura Y., Fujioka Y., Takao T., Inagaki F., Ohsumi Y. Atg12-Atg5 konjugatı, otofajide protein lipidasyonu için yeni bir E3 benzeri aktiviteye sahiptir. J. Biol. Kimya 2007; 282 :37298–37302. [ PubMed ] [ Google Akademik ]
      37. Mizushima N., Yamamoto A., Hatano M., Kobayashi Y., Kabeya Y., Suzuki K., Tokuhisa T., Ohsumi Y., Yoshimori T. Apg5-eksik fare embriyonik kök hücreleri kullanılarak otofagozom oluşumunun diseksiyonu. J. Cell Biol. 2001; 152 :657–668. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      38. Jain A., Lamark T., Sjottem E., Larsen KB, Awuh JA, Overvatn A., McMahon M., Hayes JD, Johansen T. p62/SQSTM1, NRF2 transkripsiyon faktörü için bir hedef gendir ve pozitif bir geri besleme oluşturur antioksidan yanıt elemanı güdümlü gen transkripsiyonunu indükleyerek döngü. J. Biol. Kimya 2010; 285 :22576–22591. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      39. Griffin LM, Cicchini L., Pyeon D. İnsan papilloma virüsü enfeksiyonu, birincil insan keratinositlerinde konak otofajisi tarafından inhibe edilir. Viroloji. 2013; 437 :12-19. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      40. Ishii Y. İnsan papilloma virüsü psödovirionlarının enfeksiyonu ile indüklenen otofagozomların elektron mikroskobik görselleştirmesi. Biyokimya. Biyofiz. Araş. Komün. 2013; 433 :385–389. [ PubMed ] [ Google Akademik ]
      41. Spangle JM, Munger K. İnsan papilloma virüsü tip 16 E6 onkoproteini, mTORC1 sinyalini aktive eder ve protein sentezini arttırır. J. Virol. 2010; 84 :9398-9407. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      42. Menges CW, Baglia LA, Lapoint R., McCance DJ İnsan papilloma virüsü tip 16 E7, retinoblastoma proteini aracılığıyla AKT aktivitesini yukarı doğru düzenler. Kanser Araş. 2006; 66 :5555–5559. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      43. Wang HY, Yang GF, Huang YH, Huang QW, Gao J., Zhao XD, Huang LM, Chen HL Otofaji belirteçlerinin azaltılmış ifadesi, insan servikal skuamöz hücreli karsinomda yüksek riskli insan papilloma virüsü enfeksiyonu ile ilişkilidir. Onkol. Lett. 2014; 8 :1492-1498. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      44. Wang ZH, Xu L., Wang Y., Cao MQ, Li L., Bai T. İnsan papilloma virüsü 16 enfeksiyonu ve insan rahim ağzı kanserinde Beclin 1 ekspresyonu arasındaki klinikopatolojik korelasyonlar. Int. J. Gynecol. Patol. 2011; 30 :400–406. [ PubMed ] [ Google Akademik ]
      45. Zhu W., Pan X., Li F., Zhang Y., Lu X. FIGO evre I-II servikal skuamöz hücreli karsinomda Beclin 1 ve LC3'ün ifadesi ve hayatta kalma ile ilişkisi. Tümör Biol. 2012; 33 :1653-1659. [ PubMed ] [ Google Akademik ]
      46. ​​Hu YF, Lei X., Zhang HY, Ma JW, Yang WW, Chen ML, Cui J., Zhao H. Otofaji ile ilgili belirteçlerin Beclin1, LC3 ve EGFR'nin insan servikal skuamöz hücreli karsinomunda ifadeleri ve klinik önemi. Onkol. Hedefler Orada. 2015; 8 :2243–2249. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      47. Cheng HY, Zhang YN, Wu QL, Sun XM, Sun JR, Huang X. İnsan servikal karsinomunda otofaji ile ilgili bir protein olan beclin 1'in ifadesi ve klinik önemi. Avro. J. Jinekol. Onkol. 2012; 33 :15–20. [ PubMed ] [ Google Akademik ]
      48. Mathew R., Karp CM, Beaudoin B., Vuong N., Chen G., Chen HY, Bray K., Reddy A., Bhanot G., Gelinas C., Dipaola RS, Karantza-Wadsworth V., White E. Otofaji, p62'nin ortadan kaldırılması yoluyla tümör oluşumunu baskılar. Hücre. 2009; 137 :1062–1075. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      49. Barnard RA, Regan DP, Hansen RJ, Maycotte P., Thorburn A., Gustafson DL Otofaji inhibisyonu erken evre metastatik hastalığı geciktirir, ancak geç evre değildir. J. Pharmacol. Tecrübe. orada. 2016; 358 :282–293. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      50. Li X., He S., Ma B. Otofaji ve kanserde otofaji ile ilgili proteinler. Mol. Kanser. 2020; 19:12 . [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      51. Yang S., Wang X., Contino G., Liesa M., Şahin E., Ying H., Bause A., Li Y., Stommel JM, Dell'antonio G., Mautner J., Tonon G. , Haigis M., Shirihai OS, Doglioni C., Bardeesy N., Kimmelman AC Pankreatik kanserler, tümör büyümesi için otofaji gerektirir. Genler Dev. 2011; 25 :717–729. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      52. Peng YF, Shi YH, Ding ZB, Ke AW, Gu CY, Hui B., Zhou J., Qiu SJ, Dai Z., Fan J. Otofaji inhibisyonu, anoikis direncini ve kolonizasyonu bozarak farelerde HCC'nin pulmoner metastazını baskılar HCC hücrelerinin sayısı. Otofaji. 2013; 9 :2056–2068. [ PubMed ] [ Google Akademik ]
      53. Macintosh RL, Timpson P., Thorburn J., Anderson KI, Thorburn A., Ryan KM Otofajinin inhibisyonu, bir organotipik modelde tümör hücresi istilasını bozar. Hücre döngüsü. 2012; 11 :2022–2029. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      54. Lock R., Kenific CM, Leidal AM, Salas E., Debnath J. Salgılanan faktörlerin otofajiye bağlı üretimi, onkojenik RAS güdümlü istilayı kolaylaştırır. Kanser Diskov. 2014; 4 :466–479. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      55. Beyaz E. Otofajinin kanserdeki rolü. J. Clin. Yatırım. 2015; 125 :42-46. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      56. Efferth T. Antik bitkiden modern ilaca: Kanser tedavisi için Artemisia annua ve artemisinin. Semin. Kanser Biol. 2017; 46 :65-83. [ PubMed ] [ Google Akademik ]
      57. Hu W., Chen SS, Zhang JL, Lou XE, Zhou HJ Dihidroartemisinin, NF-kappaB aktivasyonunu baskılayarak otofajiyi indükler. Kanser Let. 2014; 343 :239–248. [ PubMed ] [ Google Akademik ]
      58. Zhang J., Wang J., Xu J., Lu Y., Jiang J., Wang L., Shen HM, Xia D. Curcumin, otofajinin uyarılması için TFEB-lizozom yolunu hedefler. Oncotarget. 2016; 7 :75659–75671. [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]
      59. Fu Y., Chang H., Peng X., Bai Q., ​​Yi L., Zhou Y., Zhu J., Mi M. Resveratrol, meme kanseri kök benzeri hücreleri inhibe eder ve Wnt/beta- katenin sinyal yolu. PLoS Bir. 2014; 9 [ PMC ücretsiz makale ] [ PubMed ] [ Google Akademik ]

      Yorum yap

      Hazırlanıyor...
      X