Duyuru

Collapse
No announcement yet.

Kimyon, Caraway, Kümmel, Carum carvi

Collapse
X
  • Filtrele
  • Zaman
  • Göster
Hepsini Sil
new posts

  • Kimyon, Caraway, Kümmel, Carum carvi

    KİMYON


    İki-çok yıllık | 0,3-1m | 6-8 Aylar | Ca,Na | Tohumu ve Yağı

    Kimyon, Kümmel, Carum carvi
    Karaman Kimyonu
    Şifalı Kimyon
    Arap Kimyonu
    Frenk Kimyonu

    Familyası: Maydanozgillerden, Doldengewâchse, Apiaceace

    Drugları: Kimyon meyvesi: Carvi fructus
    Kimyon eter yağı: Carvi aetheroleum
    Kimyonun tohumları çay, baharat ve natürel ilaç, eter yağı (sadece yağı olarak geçer) ise Aroma tedavisi ve baharat olarak kullanılır.

    Giriş: Günümüzde Mısır Kimyonu olarak bilinen Carum carvi'nin 25 alt türü mevcuttur ve Türk Kimyonu olarak bilinen Cuminum cyminum'un ise yetiştiği yöreye göre Polatlı, Eskişehir, Sivrihisar ve Konya Kimyonu diye türleri mevcuttur. Arap Kimyonunun M.Ö 3000 yıllarından beri Mısırlılar tarafından kullanıldığı yapılan kazılarda n anlaşılmıştır. Mısırlılar medeniyeti Sümerler'den, yani Türkler'den almıştır. Bütün medeniyetlerin kaynağı Sümerler yani Türkler dayanır. Sümerlerde bu degerleri Orta Asyadaki ANUA Türk Medeniyetinde Ortadoğuya taşımışlardır. Ortadoğu havzasından dünyaya yayıldığı tahmin edilen Kimyonun Frenk Kimyonu diye anılması yanlıştır. Bir Alman bir Türk'e şaka yapmak için veya alay etmek için olsun Kümmel Türk yani Kimyoncu Türk der. Türklerde Almanlara Kartoftel Deutsche yani Patatesçi Alman gibi lakaplarla bazen şaka bazen de alay etmek için konuşulurdu. Bu da Türklerin eskiden beri yemeklerinde mutlaka Kimyon bulundurduğunu ve Almanlarında patatesçi olduğunu gösterir.

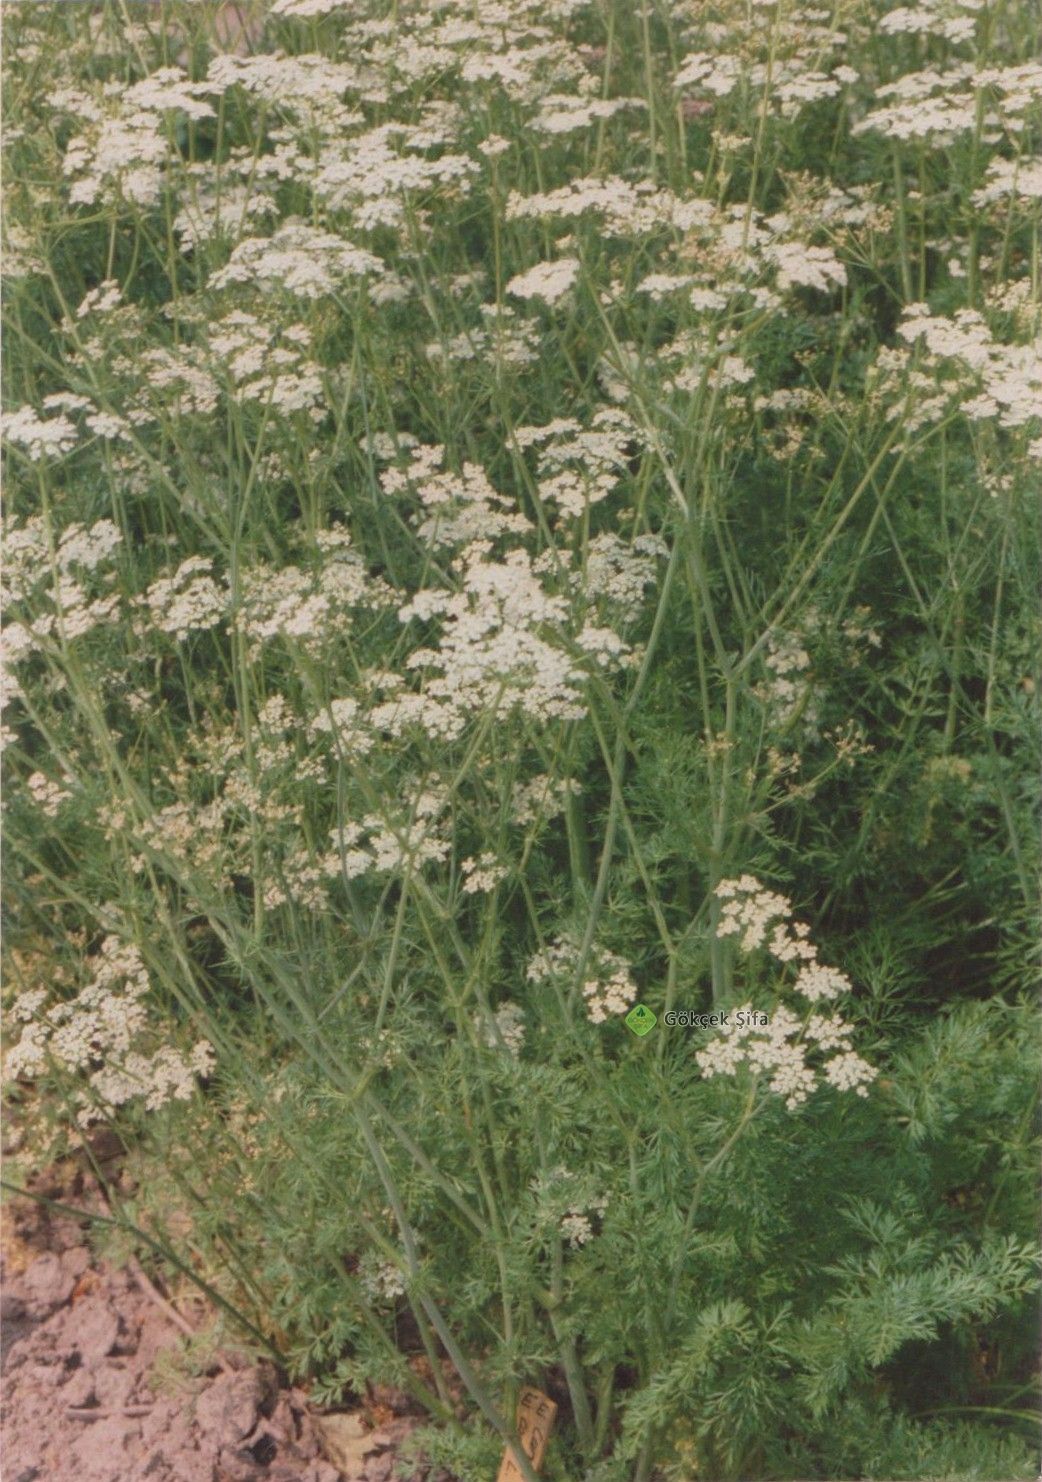
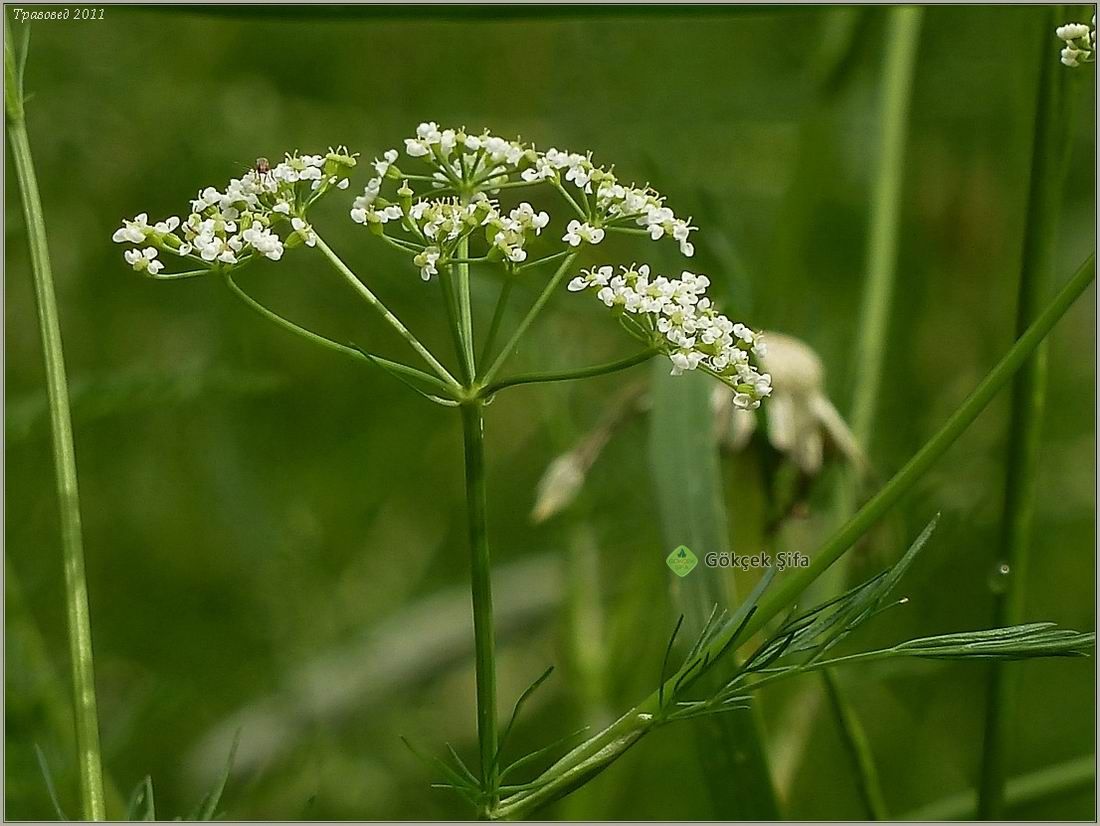
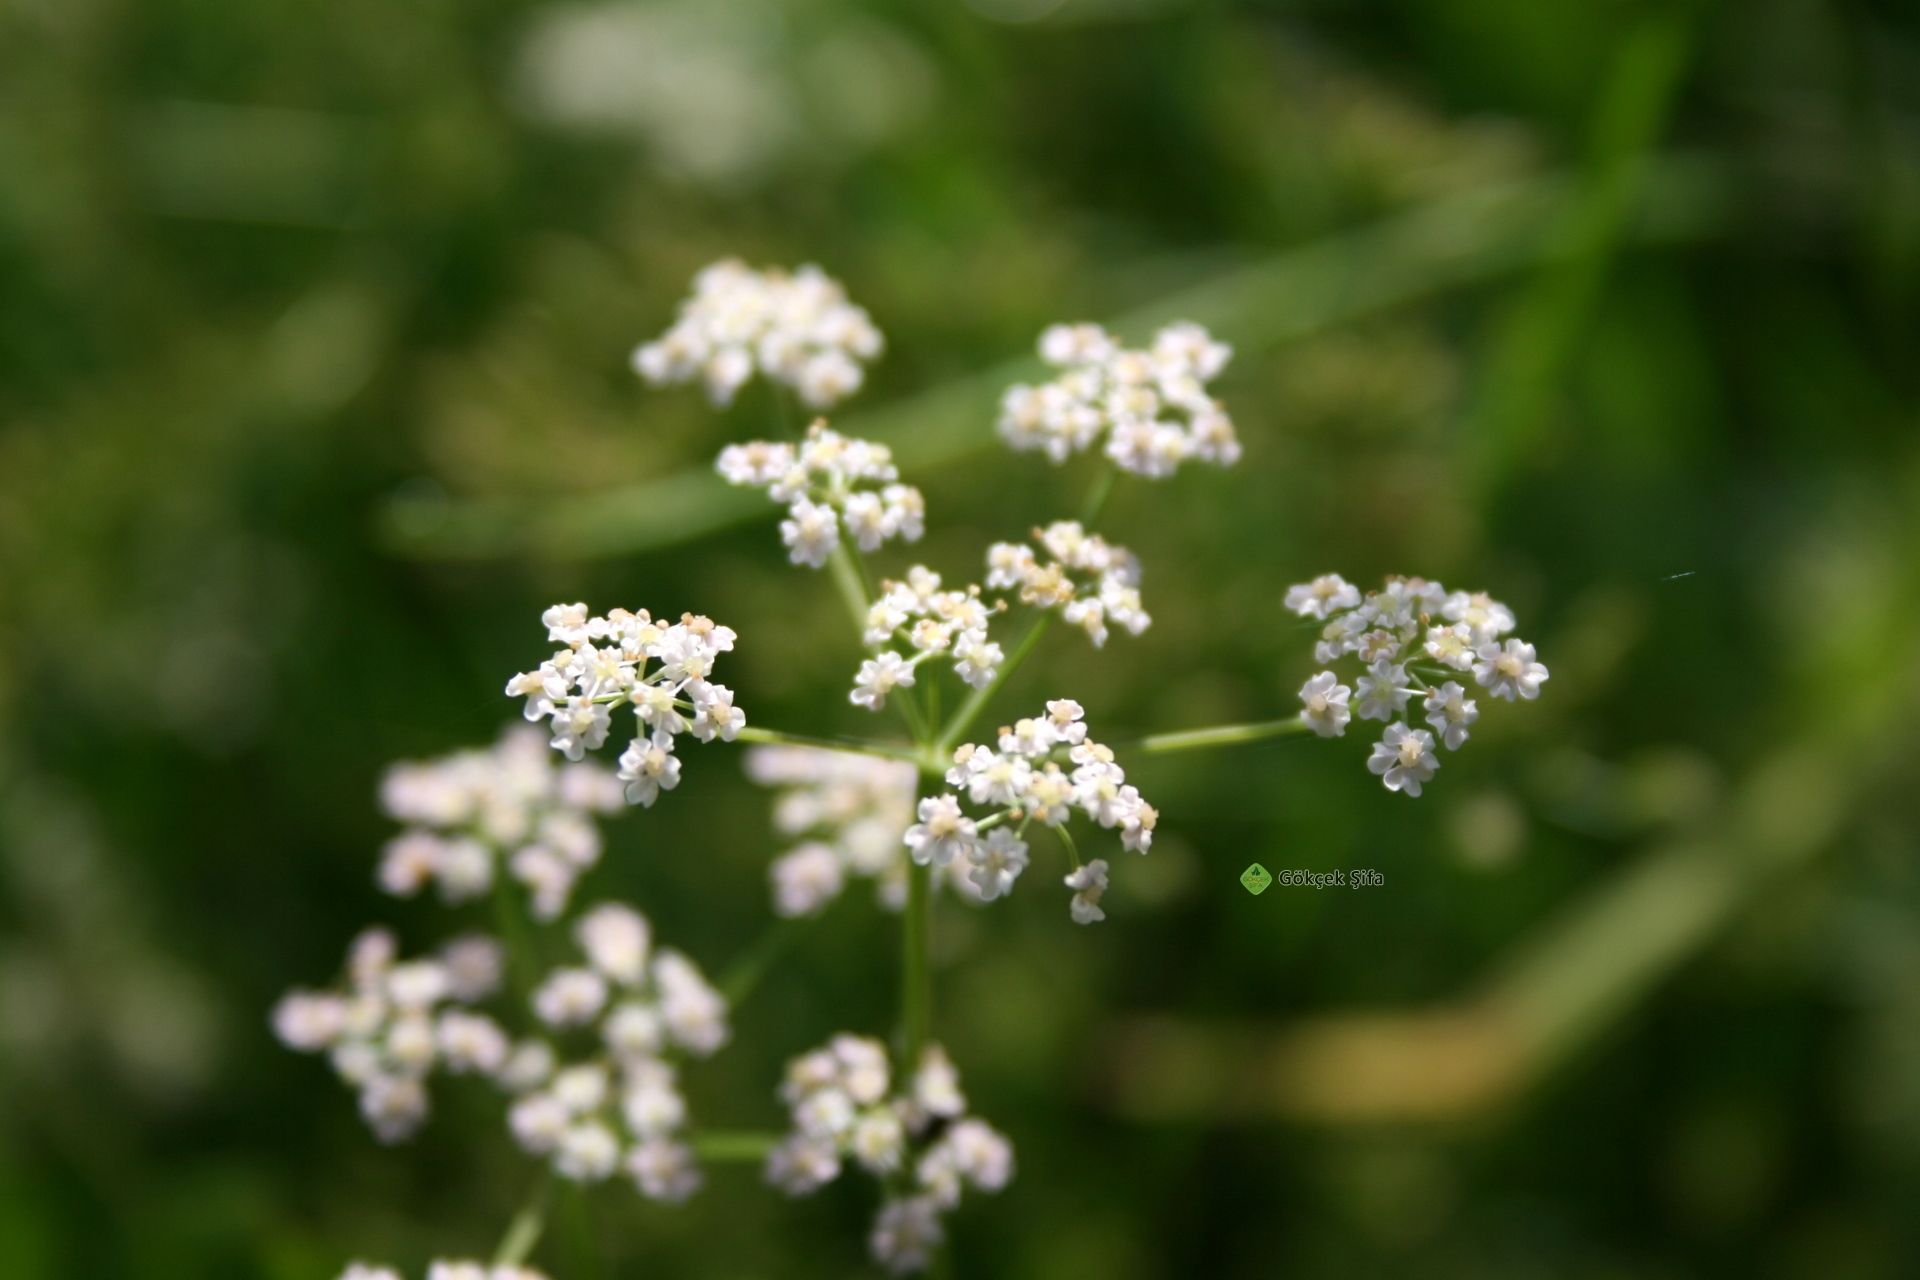
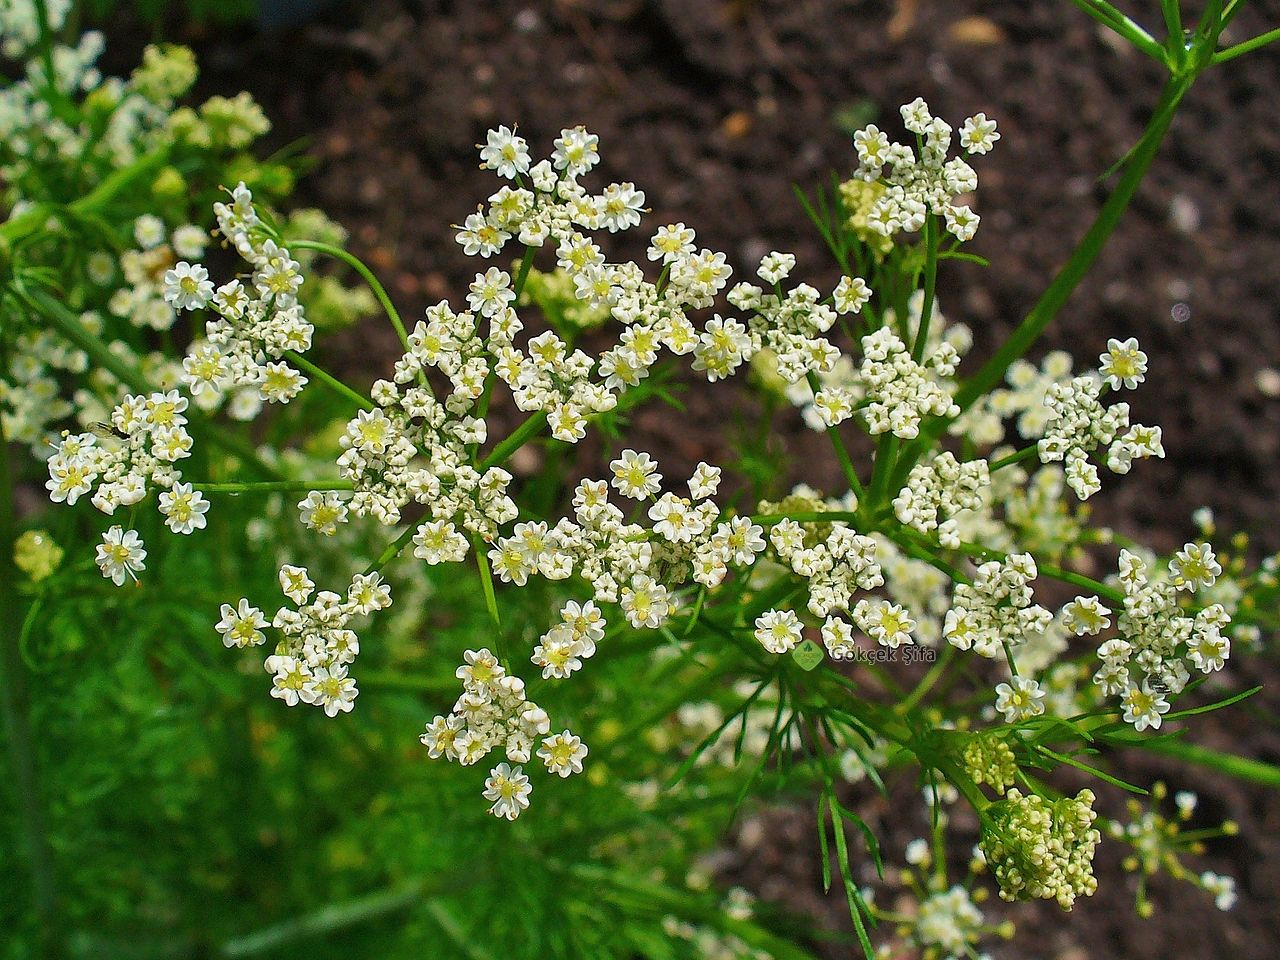
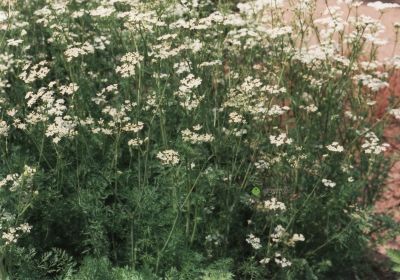
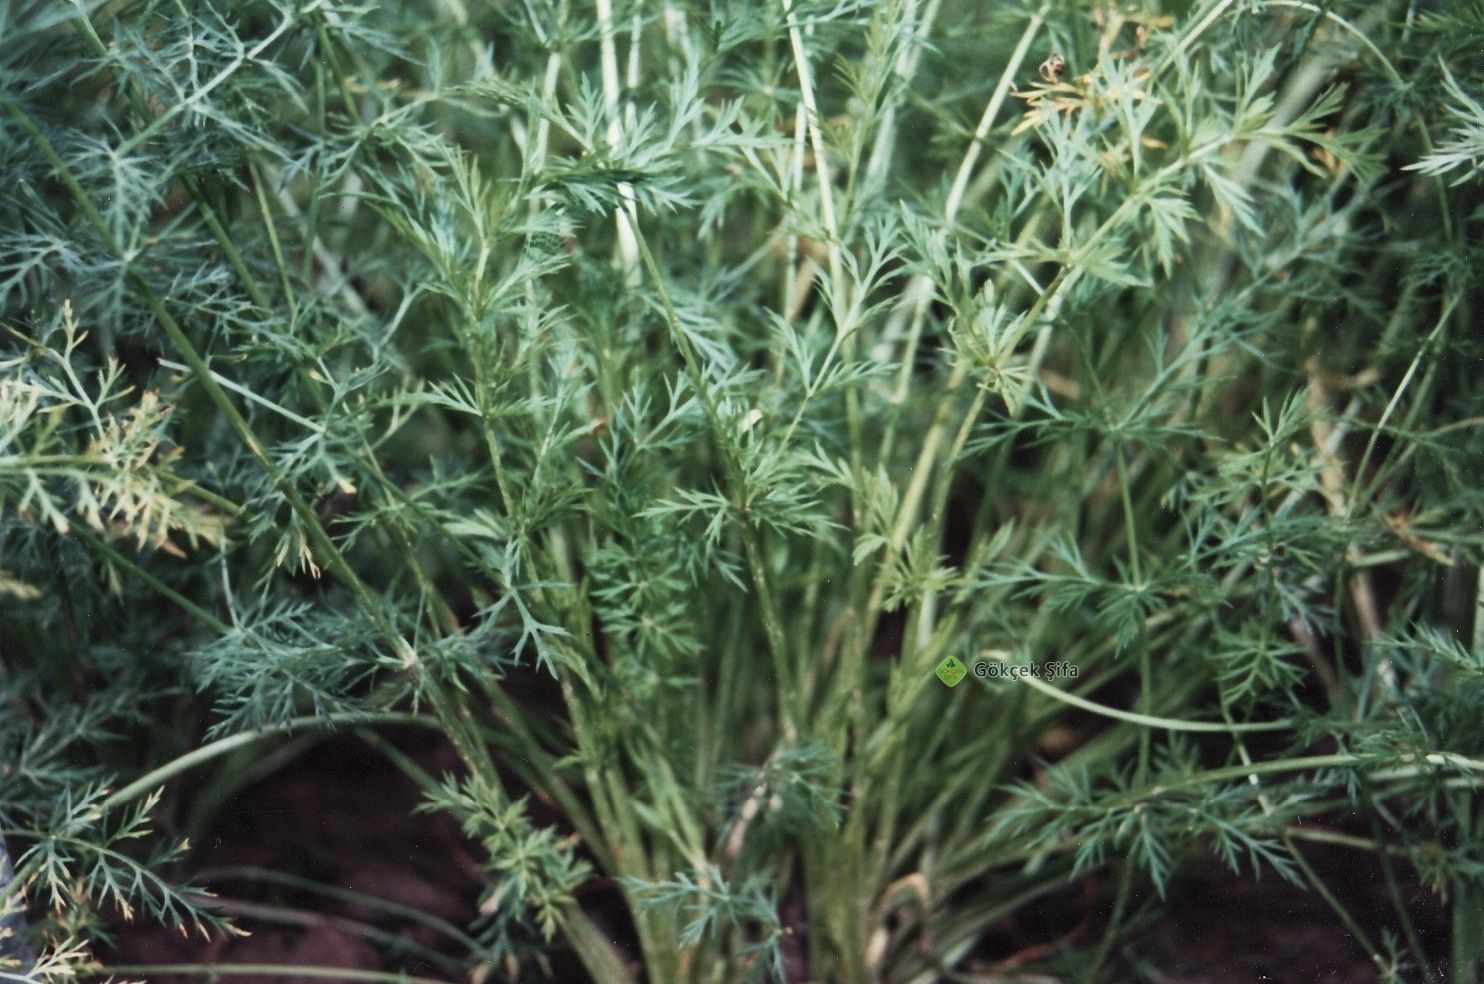
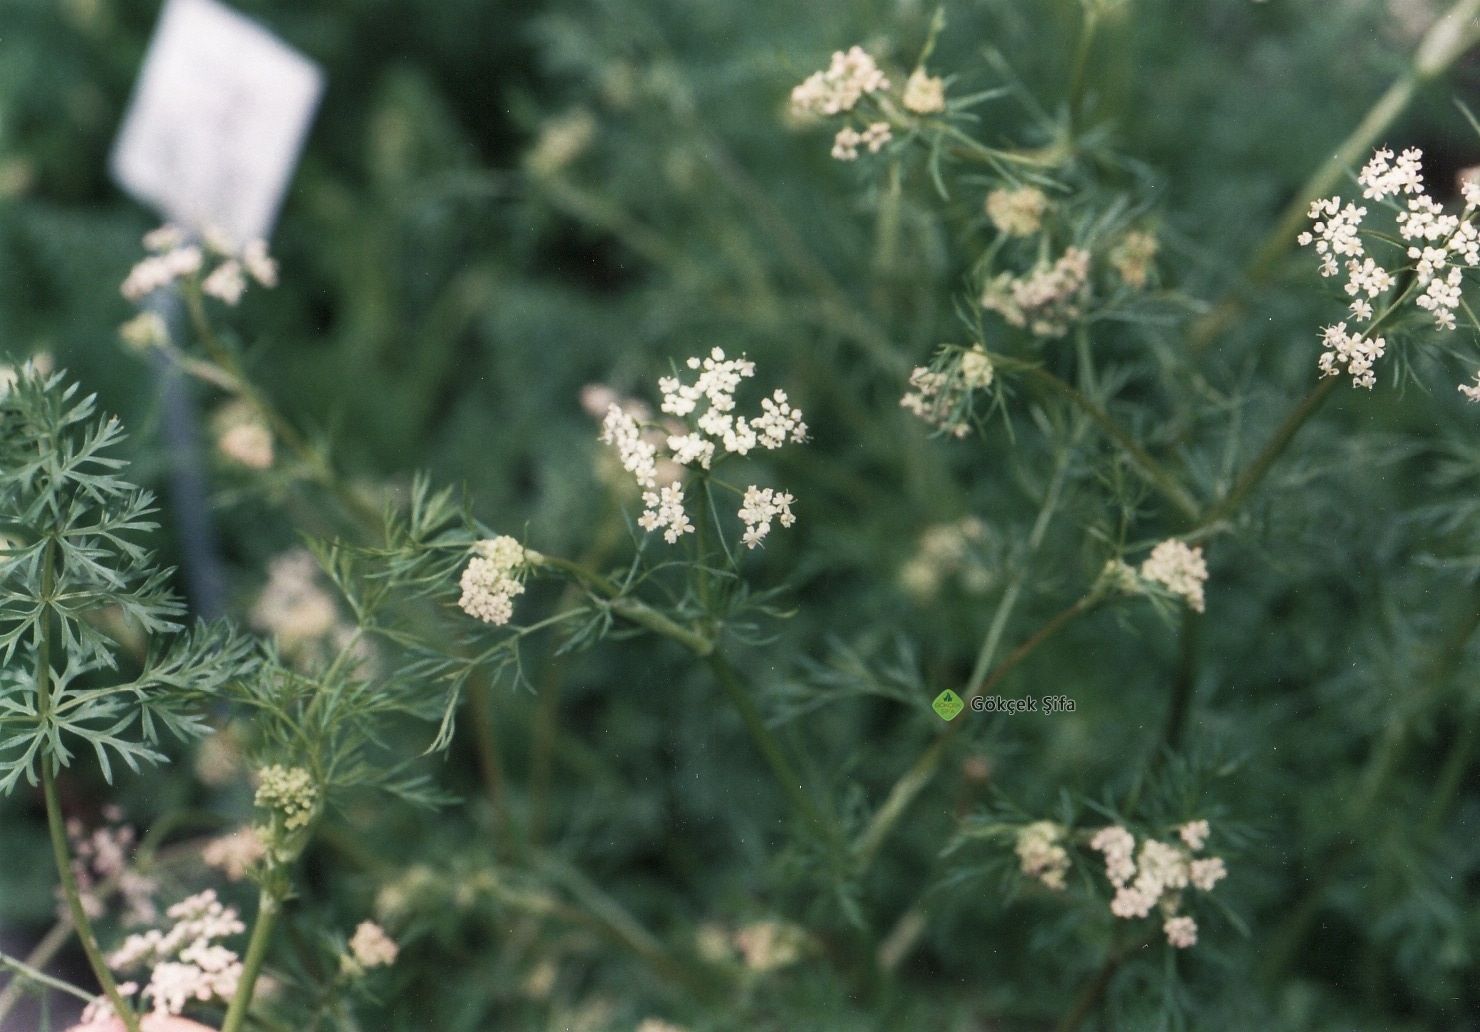
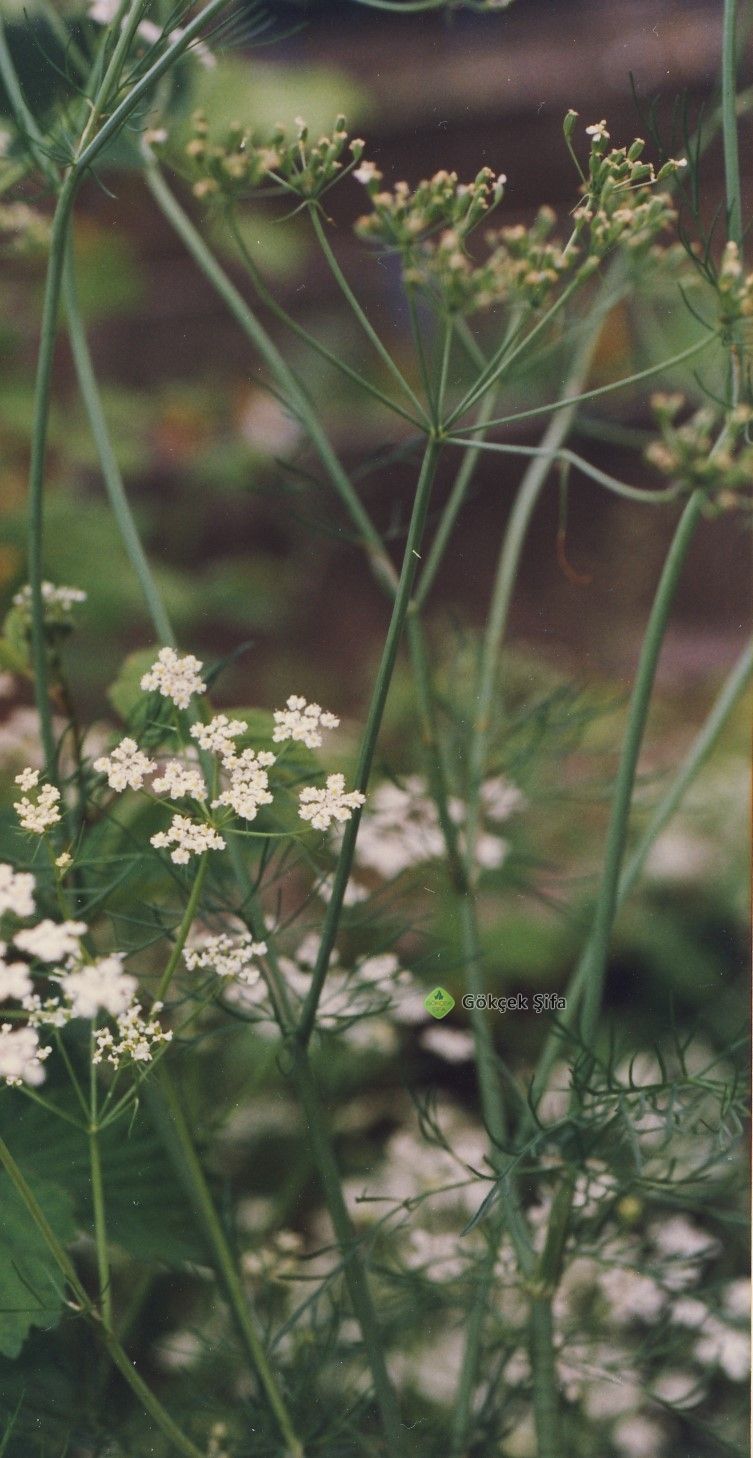
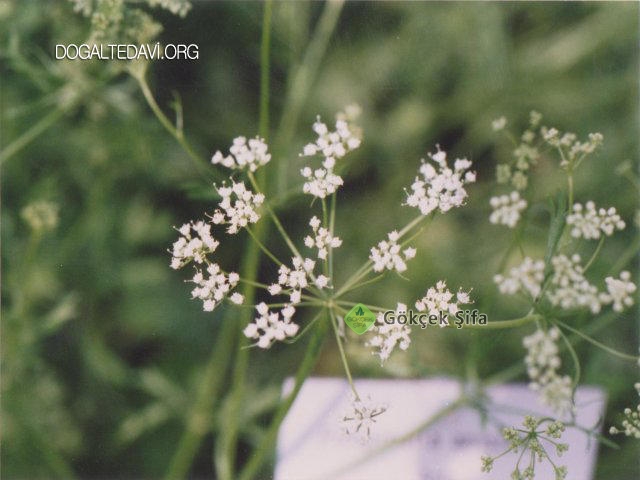
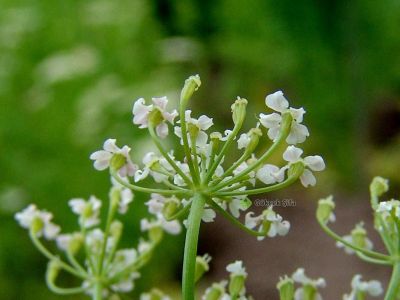
    Botanik: Bitki gebelikle 2 yıllık olup, 30-100 cm boyuna ulaşır ve havuç kökü gibi kökü vardır fakat beyaz renktedir. Altta Rozet yaprakları oldukça büyük uzun bir sap üzerinde kanat yapraklardan oluşur ve kanat yapraklar yine kanatlardan meydana gelir. Gövdedeki yapraklar sapsız yani direk oturmuştur. Rozet yaprakları çok hafif geniş iken en üstteki yaprakları ince ve ipliğimsidir. Çiçekleri oldukça küçük, beyaz, nadiren pembe veya kırmızımsı renkte ve yumurta şeklindeki 5 adet taç yaprak-tan meydana gelir. Bir şemsiyecikte 10-20 çiçek bulunur ve 7-15 şem-siyecik bir şemsiye meydana getirir. Bir meyve kapsülünde iki tohum bulunur ve 4-6 mm uzunluğunda üzerinde boydan boya uzanan yay şek-linde çıkıntılar bulunur ve genellikle esmer renkte ve orak şeklindedir.

    Yetiştirilmesi: Türkiye'nin hemen her yöresinde yetiştirmek mümkündür ve zaten yetiştirimektedir.

    Hasat zamanı: Olgunlaşması Haziran'dan Eylül'e kadar sürer zira ana şemsiyeler olgunlaşırken henüz yan şemsiyeler olgunlaşmamıştır. Bu nedenle hasatı belli sürelerle devam eder. Maydanozgiller birbirine çok benzerler ve bu nedenle de yanlışlıkla zehirli bitkilerin toplanarak Kimyon hasatına karıştırılmaması çok önemlidir.

    Birleşimi: Birleşimindeki maddeleri önemine göre şöyle sıralayabiliriz;
    a) eter yağı türevleri %3-7 arasında olup bunu %50-65'ini S-(+)-Carvon ve %30-45 R-(+)-Limonen içerir ve geriye kalan çok az miktar ise; Sabinen, 3-Caren, β-Pinen, Myrcen, α-Phellandren, Dihydrocarvon, Carveol ve dihydrocarveol'dan oluşur.
    b) Sabit yağlar %10-15 arasında olup en önemlileri; Petroselinasit %35-50, Oleik asit %20-30 ve az miktarda Palmitasit ve Steariasit içerir.
    c) Flavonitler ve Flavonitglikozitler %0,05-0,1 arasında olup Quercetin ve Kâmpferol ve bunların glikozitlerinden; Quercetin-3-0-β-0-glikozit (Isoquercitrin) ve Kâmpferol-3-0-β-0-glikozit (Astragalin) içerir.
    d) Fenolasitlerden; Kafleeasit, Ferulaasit, Syrinasit, Vani,llinasit içerir.
    e) Cumarinlerden (Kumarinler); Bergapten ve Nanthotoxin içerir.

    Tesir şekli: Karminatif (gaz söktürücü), krampları (spazm) çözücü, bal-gam söktürücü, annelerin sütünü artırıcı, bakterileri öldürücü, mantarları yok edici, mideyi kuvvetlendirici ve bağırsakları teskin ettiricidir.

    Araştırmalar:
    1) Azerbaycan'da Kimyon yağı ile G.G.İbrahimov ve ekibi 1985'de bir tedavi denemesi yapmışlardır. Bu deney sonucunda Kimyon yağının Nsytatin'de daha etkili bir mantar yok edici öldürücü özelliğe sahip olduğunu tespit etmişlerdir. (Azer. Med. 62.44.1985)
    2) Kimyon tohumunu veya yağının (Eter yağı) gaz söktürürcü özelliğinin ise belgelenmeye ihtiyacı yoktur. Hemen hemen herkes tarafından bu özelliği bilinir.
    3) H.B.Forster, H.Nikas ve S. Lutz'un kobaylar üzerinde yaptıkları araş-tırmalar sonucunda Kimyon tohumu ve yağının krampları çözücü olduğunu belgelemişlerdir. (Planta Med.40(4) 309-319)

    Kullanılması:
    a) Araştırmalara göre bağırsak mantarı, şişkinliğe karşı ve kramp çözücü olarak kullanılır.
    b) Komisyon E'ye göre; Alman Sağlık Bakanlığı'na bağlı olarak çalışan Komisyon E 22a No'lu ve 01.02.1990 tarihli Monografisi'ne (Bildirisine) göre; Kimyon tohumu ve yağı dispepsi (sindirim yetersizliği) rahatsızlıklarından; hafif kramplı mide ve bağırsak rahatsızlıkları, şişkinlik e hazımsızlığa karşı kullanılır.
    c) Aroma tedavisinde Kimyon yağı şişkinlik krampları ve bağırsaklarda kokuşma ve iştahsızlığa karşı kullanılır.
    d) Halk arasında mide zafiyeti, mide krampı, karaciğer ve safra rahat-sızlıkları, bağırsak bozuklukları, sinirsel kalp ve mide rahatsızlıkları, ağız kokusu ve bebeklerde sindirim zorluğu gibi rahatsızlıklara karşı ve annelerin sütünü artırmak için kullanılır. Şayet bebek ve küçük çocuklardaki şişkinlik ve hazımsızlığa karşı sadece rezene tohumundan çay yapılır ve verilir ise bu çay bebeklerin ve çocukların süt dişlerini çürütür ve bu nedenle Kimyon, Papatya çiçeği, Anason ve Kakule tercih edilir.

    Çayı: Kimyon tohumunun çayı yapılmadan hemen önce öğütülmesi veya öğütülmeden çayının yapılması tavsiye edilir. Öğütülmüş olarak satılan kimyonun (tozu) kalite bakımından düşüktür ve hoş olmayan bir kokuya sahiptir. Kimyon tohumu öğütüldükten 24 saat sonra kullanılmaz ise birleşimindeki sabit yağlar bozularak aromasını bozar. Bir kahve kaşığı taze öğütülmüş (günlük öğütmek gerekir) veya hafif ezilmiş Kimyon tohumu demliğe konur ve üzerine 300-500 ml kaynar su ilave edilerek 5-10 dk demlenmesi beklenir ve sonra süzülerek içilir.

    Çay Harmanları;

    Gökçek Mide ve Bağırsak çayı(şişkinlik,tıkanma ve sinirsel mide ağrısı)
    >30 gr Anason tohumu
    >30 gr Kimyon tohumu
    >30 gr Rezene tohumu
    >10 gr Tarçın kabuğu

    Gökçek Stres çay;
    >30 gr Kediotu kökü
    >20 gr Oğul otu yaprağı
    >20 gr Çarkıfelek otu
    >20 gr Nane yaprağı
    >10 gr Meyan kökü

    Gökçek Mide-bağırsak çayı;
    >25 gr Kimyon tohumu
    >25 gr Rezene tohumu
    >25 gr Kantaron otu
    >25 gr Papatya çiçeği
    >25 gr Kaz otu

    Gökçek Şişkinlik çayı;
    >20 gr Kimyon tohumu
    >20 gr Rezene tohumu
    >20 gr Kakule
    >20 gr Papatya çiçeği
    >20 gr Oğul otu yaprağı

    Gökçek Safra çayı;
    >20 gr Mübarek otu
    >20 gr Nane yaprağı
    >20 gr Pelin otu
    >20 gr Devedikeni tohumu
    >20 gr Kimyon tohumu

    Gökçek Mide ve Bağırsak çayı (tıkanma, şişkinlik)
    >30 gr Rezene tohumu
    >30 gr Kimyon tohumu
    >30 gr Melek otu kökü
    >10 gr Tarçın kabuğu

    Gökçek Şişkinlik çayı;
    >20 gr Melek otu kökü
    >20 gr Anason tohumu
    >20 gr Rezene tohumu
    >20 gr Kimyon tohumu
    >20 gr Kakule

    Gökçek Mide çayı;
    >20 gr Nane yaprağı
    >20 gr Kantaron otu
    >20 gr Civanperçemi otu
    >20 gr Kimyon tohumu
    >20 gr Papatya çiçeği

    Gökçek Bebek Gaz çayı;
    >20 gr Kimyon tohumu
    >20 gr Rezene tohumu
    >20 gr Anason tohumu
    >20 gr Oğulotu yaprağı
    >15 gr Isırgan otu
    >5 gr Kılıç otu

    Gökçek Karaciğer ve Safra çayı;
    >20 gr Devedikeni tohumu
    >20 gr K.hindiba otu
    >20 gr Zerdeçal kökü
    >20 gr Kırlangıçotu
    >10 gr Kimyon tohumu
    >10 gr Nane yaprağı

    Gökçek Mide asidi yetersizliK çay;
    >20 gr Papatya çiçeği
    >20 gr Kantaron otu
    >20 gr Pelin otu
    >20 gr Zencefil kökü
    >20 gr Kimyon tohumu

    Gökçek Mide ve Bağırsak çayı (şişkinlik,tıkanma)
    >30 gr Anason tohumu
    >30 gr Rezene tohumu
    >15 gr Kişniş tohumu
    >15 gr Kimyon tohumu
    >10 gr Ebe gömeci çiçeği

    Gökçek Stres çayı;
    >20 gr Kediotu kökü
    >20 gr Oğul otu yaprağı
    >20 gr Çarkıfelek otu
    >20 gr Kılıç otu
    >10 gr Kimyon tohumu
    >10 gr Meyan kökü

    Gökçek Uyku çayı;
    >20 gr Oğul otu
    >20 gr Kediotu kökü
    >20 gr Kılıç otu
    >20 gr Kimyon tohumu
    >10 gr Rezene tohumu
    >10 gr Ihlamur

    Gökçek Bebek ve küçük çocuklara şişkinlik çayı;
    >30 gr Anason tohumu
    >30 gr Kimyon tohumu
    >20 gr Kakule
    >10 gr Papatya çiçeği
    >10 gr Rezene tohumu

    Gökçek Mide-Bağırsak çayı(şişkinlik ve hazımsızlığa karşı);
    >40 gr Kişniş tohumu
    >30 gr Rezene tohumu
    >20 gr Kimyon tohumu
    >10 gr Oğul otu yaprağı

    Gökçek Bebeklerdeki şişkinliğe karşı çay;
    >25 gr Anason tohumu
    >25 gr Rezene tohumu >25 gr Kimyon tohumu
    >15 gr Isırgan otu
    >10 gr Papatya çiçeği

    Bah: Kimyon tohumu ve Eter yağı başka her türlü sulu,etli yemekler ve çorbalara, sebze, patates, peynir, salata, ekmek ve özellikle de lahanalı yemeklere katılır. Lahanalı yemekler şişkinlik yapabilir, işte bu durumda yemeğe bir miktar Kimyon tohumu7 katılır ise şişkinlik giderilebilir.

    Ar: Kimyon tohumu su buharı ile damıtılarak (destilasyon) Eter yağı elde edilir. Bu Eter yağından 2-3 damla yemek ve çorbalara katılır. Eter yağı da başta; antidepresif (depresyonu önleyici), krampları çözücü, şişkinliği giderici, safra artırıcı, iştah açıcı ve hafif cinsel gücü artırıcı özelliklere sahiptir. 2-3 damla bir kesme şekere veya bir parça ekmeğe damlatılarak alınabilir.

    Yan tesirleri: Tarife uyulduğunda bilinen bir yan tesiri yoktur fakat Eterik yağı çok etkili olduğundan 2-3 damla kullanılmalıdır. H.Ş. Peygamber Efendimiz “Sizlere Sinameki, Tereyağı, Bal ve Kimyonu tavsiye ederim, zira bunlar Sâm'dan başka her derde devadır” buyurmuşlardır. Sâm2ın ne olduğu sorulduğunda; ölüm demiştir.

    B)Mısır Kimyonu, Kreuzkümmel, Cuminum cyminum
    Bu Kimyonun asıl vatanı Mısır olup buradan diğer ülkelere yayılmıştır ve günümzde genellikle Türkiye, İran, Fas, Hindistan, Pakistan, Çin, Endo-nezya gibi ülkelerde yetiştirilmektedir. Tohumları 4-6 mm uzunluğunda, 1-1,5 mm eninde açık grimsi sarı renkte ve üzeri hafif tüylüdür. Bir-leşiminde %3-6 oranında Eter yağı bulunur ve en önemlileri %25-40 Cuminaldehid, 8-Terpinen 15-20, β-Pinen 10-20 ve diğerinden oluşur. Görüldüğü gibi bileşimindeki Eter yağı çok farklı bir yapıya sahiptir. Su buharı destilasyonu ile damıtılarak elde edilen Eter yağıda aynı Şifalı Kimyon yağı gibi kullanılır. Tohumları da aynı Kimyon tohumu gibi kul-lanılırsa da daha az oranda alınması tavsiye edilmektedir.
    Kimyon (Cuminum cyminum L.) ekstraktının cilt beyazlatma mekanizması

    Ya Wang 1, Guo Ying Du 1, Tao Guo 2, Hong Mei Zou 3, Dan Jia 3
    üyelikler yıkılmak üyelikler

    • 1Yaşam Bilimi ve Mühendisliği Okulu, Lanzhou Teknoloji Üniversitesi, Lanzhou, Çin/Gansu Eyaleti, Lanzhou, Çin Geleneksel Çin ve Tibet Tıbbı için İlaç Tarama ve Derin İşleme Ana Laboratuvarı.
    • 2Yaşam Bilimleri ve Mühendisliği Okulu, Lanzhou Teknoloji Üniversitesi, Lanzhou, Çin/Eczacılık Bölümü, Henan Çin Tıbbı Üniversitesi, Zhengzhou, Çin.
    • 3Yaşam Bilimleri ve Mühendisliği Okulu, Lanzhou Teknoloji Üniversitesi, Lanzhou, Çin.
    • PMID: 34248006
    Soyut

    Cilt beyazlatma etkisi, melanogenez önleyici aktivite ve serbest radikal temizleme kapasitesi ile yakından bağlantılıdır. Bu çalışmanın amacı, kimyon (Cuminum cyminum L.) ekstraktının cilt beyazlatma etkisini değerlendirmektir. Beyazlatma aktivitesi, B16F10 murin melanom hücreleri kullanılarak hücresiz mantar tirozinaz testi, serbest radikal temizleme testi, hücre canlılığı testi, hücresel tirozinaz testi ve melanin içeriği testi ile değerlendirildi. Sonuçlar, kimyon ekstraktının mantar tirozinazının (IC 50) hem monofenolaz hem de difenolaz aktiviteleri üzerinde konsantrasyona bağlı inhibitör etki gösterdiğini göstermiştir.sırasıyla 1,027mg/mL ve 0,977mg/mL değerleri). Difenolaz üzerinde yapılan kinetik çalışma, kimyon ekstraktının tersinir bir karışık tip inhibitör olduğunu gösterdi ve inhibisyon sabiti (KI) 0.62mg/mL olarak belirlendi. Ek olarak, kimyon özü, B16F10 melanom hücrelerinin melanin üretimini ve hücresel tirozinaz aktivitesini, sitotoksisite olmaksızın konsantrasyona ve zamana bağlı bir şekilde önemli ölçüde bastırdı. Ayrıca, kimyon ekstresi DPPH, hidroksil ve süperoksit anyon radikalleri üzerinde güçlü süpürme kapasitesi uygulamıştır. Birlikte ele alındığında, bu sonuçlar, kimyonun kozmetik endüstrisi için potansiyel bir cilt beyazlatma maddesi olduğunu kuvvetle önerir.
    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

  • #2
    Carum carvi esansiyel yağının Candida albicans'ta ERG6 gen ekspresyonu ve virülans faktörleri üzerindeki etkisi

    Samira Nasiri , 1 Masoomeh Shams Ghahfarokhi , 1* ve Mehdi Razzaghi Abyaneh 2
    Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
    1 Mikoloji Anabilim Dalı, Tıp Bilimleri Fakültesi, Tarbiat Modares Üniversitesi, Tahran, İran
    2 Mikoloji Bölümü, İran Pasteur Enstitüsü, Tahran, İran
    Sorumlu yazar: Masoomeh Shams Ghahfarokhi; Tarbiat Modares Üniversitesi Tıp Bilimleri Fakültesi Mikoloji Anabilim Dalı, Tahran, İran.

    Geçmiş ve Amaç:

    Bu çalışma, Carum carvi esansiyel yağının (EO) Candida albicans'ta mantar büyümesi ve bazı önemli virülans faktörleri ile ilgili olarak ERG6 gen ekspresyonuna karşı inhibe edici etkilerini araştırmak için yapılmıştır .

    Malzemeler ve yöntemler:
    C. carvi EO'nun C. albicans'a karşı minimum inhibe edici konsantrasyonu (MIC) , 20-1280 μg/ml konsantrasyon aralığında Clinical and Laboratory Standards Institute M27-A4 yöntemiyle belirlendi. Ayrıca, ERG6 geninin ekspresyonu, gerçek zamanlı polimeraz zincir reaksiyonu kullanılarak C. carvi EO'nun 0.5x MIC konsantrasyonunda incelenmiştir . C. albicans'ın proteinaz ve fosfolipaz aktiviteleri, hücre yüzeyi hidrofobikliği (CSH) ve hücre zarı ergosterol (CME) içeriği de onaylanmış yöntemler kullanılarak bitki EO'sunun 0.5 x MIC konsantrasyonunda değerlendirildi. Ayrıca kontrol antifungal ilaç olarak flukonazol (FLC) kullanıldı.

    Sonuçlar:
    Sonuçlar, C. carvi EO'nun C. albicans büyümesi için MIC ve minimum fungisidal konsantrasyonunun sırasıyla 320 ve 640 μg/ml olduğunu göstermiştir. Fungal ERG6'nın bir mRNA düzeyinde ekspresyonu ve maya hücrelerinin ergosterol içeriği, hem C. carvi EO (640 μg/ml) hem de FLC (2 μg/ml) tarafından önemli ölçüde azaltılmıştır. Proteinaz ve fosfolipaz aktiviteleri de C. carvi EO'da sırasıyla %49.82 ve %53.26 oranında azalırken, FLC ile muamele edilmiş kültürlerde sırasıyla %27.72 ve %34.67 oranında inhibe edildi. Ayrıca CSH, EO ve FLC ile muamele edilmiş kültürlerde sırasıyla %12.75 ve %20.80 oranında inhibe edilmiştir.


    Çözüm:
    Bulgularımız, C. carvi EO'nun C. albicans'a karşı etkili bir antifungal ajanın geliştirilmesinde potansiyel bir doğal bileşik olarak kabul edilebileceğini ortaya koydu .

    Anahtar Kelimeler: Antifungal aktivite, Candida albicans , Carum carvi , ERG6 , Virülans faktörleri
    Git: Giriş

    Candida türlerine bağlı enfeksiyonların prevalansı , özellikle bağışıklık sistemi baskılanmış durumda olanlar ve AIDS, doku nakli, antibiyotik tedavisi ve malignite hastalıkları gibi farklı durumları olan hastalarda son otuz yılda artmıştır [ 1 ]. Candida albicans , hifal geçişini, yüzey tanıma moleküllerini, fenotipik geçişi ve virülans faktörleri olarak atfedilen hücre dışı hidrolitik enzim üretimini teşvik ederek insan vücudunun çeşitli bölgelerini derinlemesine istila eden önemli bir patojenik ajandır [ 2 , 3 ]. Fosfolipazlar ve salgılanan proteinazlar gibi hücre dışı hidrolitik enzimler, yapışmayı, doku penetrasyonunu ve konak istilasını kolaylaştırır [ 2 - 4 ].

    C. albicans'ın konakçı hücrelere yapışması, hücre yüzeyi hidrofobikliği (CSH) ile ilgili mantar enfeksiyonunda önemli bir erken adımdır [ 2 , 5 ]. Candida albicans ayrıca tıbbi cihazların yüzeylerine yapışabilir ve biyofilmler oluşturabilir. Virulans derecesi ile enfeksiyon oluşturma yeteneği arasında pozitif bir ilişki olduğu iyi bir şekilde belgelenmiştir [ 6 ]. ERG6'nın ergosterol biyosentezi için varsayılan bir yapısal gen olduğu ve mantar hücre zarının normal işleyişi için gerekli olduğu bildirilmiştir [ 7 ] .

    Birçok çalışma , kandidiyazın teşhisini, tedavisini ve önlenmesini kolaylaştırmak için Candida türlerindeki patojenik faktörleri ele almıştır
    [ 8-11 ] . Antifungal aktiviteye sahip bitkisel ajanlar, yüksek üretim maliyeti ve çok sayıda yan etkisi olan sentetik antifungal ilaçların sınırlamaları açısından kimyasal ilaçlar için ideal bir alternatif oluşturmaktadır [ 8 ]. Buna göre, birçok bitki türünün antibakteriyel ve antifungal etkileri son yirmi yılda geniş çapta araştırılmıştır [ 12-17 ] .

    Carum carvi L. (kimyon), Umbelliferae familyasına ait tek yıllık otsu bir bitkidir. Bitki, İran'ın bazı belirli bölgelerine özgüdür ve gıdalarda ve bitkisel ilaçlarda kullanılmaktadır [
    18 ]. Carum carvi , hem geleneksel hem de modern tıpta güçlü bir antifungal ve antimikrobiyal bileşik olarak belgelenmiştir [ 19-21 ] . Bu çalışma, C. carvi esansiyel yağının (EO) C. albicans'ın büyümesi, proteinaz ve fosfolipaz aktiviteleri, CSH ve hücre zarı ergosterol (CME) içeriği üzerindeki potansiyel etkisini araştırmak için yapılmıştır . Bu çalışma aynı zamanda C. carvi EO'nun ERG6 üzerindeki etkisinin değerlendirilmesini de içermektedir.gerçek zamanlı polimeraz zincir reaksiyonu (PCR) deneyi kullanılarak gen ekspresyonu.

    Malzemeler ve yöntemler
    Mantar suşu ve Carum carvi esansiyel yağı
    Çalışmanın amacı doğrultusunda, C. albicans standart suşu ATCC10231, İran Pasteur Enstitüsünün Patojenik Mantar Kültürü Koleksiyonundan (//fa.pasteur.ac.ir/VisitDetails.aspx?Id=1311) elde edildi . Suşlar, 37°C'de 48 saat boyunca Sabouraud dekstroz agarda (Merck, Almanya) kültürlendi. Ayrıca piyasadan C. carvi tohumları satın alınmıştır. Bitki materyalleri, tam bir cam aparat içinde 90 dakika süreyle buharla damıtıldı. EO ayrıca sterilize edilmiş tohumların Clevenger tipi bir aparat kullanılarak 4 saatlik bir süre boyunca hidrodistilasyonuyla hazırlandı. EO verimi yaklaşık %0.25 idi ve 4°C'de tutuldu [ 21 ].

    Antifungal duyarlılık testi
    Antifungal duyarlılık analizi, Ulusal Klinik Laboratuvar Standartları Komitesi CLSI M27-A4 yönteminin [ 22 ] kılavuzlarına göre yapılmıştır. Kısaca, C. albicans ,  3-(N-morfolino) propansülfonik asit ortamı kullanılarak RPMI-1640'ta (Sigma-Aldrich, ABD) 0.5-2.5x10³ CFU/mL'lik bir nihai konsantrasyona ayarlandı ve daha sonra bir 96'ya eklendi . -kuyu plakası. Stok solüsyonu hazırlamak için C. carvi EO, 100 mg/ml'lik nihai bir konsantrasyon elde etmek üzere dimetil sülfoksit (Sigma-Aldrich, ABD) içinde çözüldü. Daha sonra, 20-1280 ug/ml'lik nihai konsantrasyonları elde etmek için RPMI içinde EO'nun iki kat seri dilüsyonları hazırlandı.

    Flukonazol için, metanol (Merck, Almanya) içindeki bir flukonazol stok çözeltisinden (Sigma-Aldrich, ABD) 0.5-256 ug/ml'lik seri iki kat konsantrasyonlar hazırlandı. Plakalar, 35°C'de 24-48 saat süreyle inkübe edildi. C. carvi EO ve flukonazolün minimum inhibe edici konsantrasyonu (MIC), görsel tahlil ile 96 oyuklu mikroplakalarda mantar büyümesinin %100 inhibisyonu olarak tanımlandı. Minimum fungisidal konsantrasyonu (MFC) belirlemek için, görsel mantar gelişimi olmayan MIC üzerindeki her kuyucuğun içeriğinin 50 ul'si Sabouraud dekstroz agar (SDA) plakalarına aktarıldı ve 72 saat 35°C'de inkübe edildi. MFC, SDA plakalarında üremeye neden olmayan minimum EO ve flukonazol konsantrasyonu olarak tanımlandı. Tüm testler, üç ayrı deneyde üç kopya halinde gerçekleştirildi.

    Proteinaz aktivite testi
    Proteinaz aktivitesinin belirlenmesi, Dabiri ve arkadaşlarına göre değerlendirildi. [ 11 ]. Kısaca, 10 ul 18 saatlik bir maya süspansiyonu (106 hücre/ml), dekstroz (%2), MgS04 (%0.05), KH2PO4 (%0.1) ve agar içeren sığır serum albümini (%1) ortamı üzerine aşılandı. (%2) C. carvi EO (160 μg/ml) ve flukonazolün (2 μg/ml) 0,5 MİK konsantrasyonu ile. Petri kutuları 35oC'de 5 gün inkübe edildi ve trikloroasetik asit (TCA, %20) ile fikse edildi. Maya kolonilerinin etrafındaki proteoliz bölgesi, Price ve arkadaşlarına göre ölçüldü. [ 23 ].

    fosfolipaz aktivite testi
    Fosfolipaz üretimi, Samaranayake ve arkadaşlarına göre mantar kolonisi etrafındaki çökelme bölgesi tarafından belirlendi. biraz değiştirilmiş bir yöntem kullanarak [ 24 ]. Yumurta sarısı agar ortamı, SDA (13 g; Merck, Almanya), NaCl (11.7 g), CaCl2 (0.111 g) ve %10 steril yumurta sarısından oluşuyordu. Bu nedenle, 10 ul maya süspansiyonu (106 hücre/ml), C. carvi EO (160 ug/ml) ve flukonazol (2 ug/ml) ile yumurta sarısı ortamına aşılanmıştır . Mantar kolonisi etrafındaki çökelme bölgesi, 35ºC'de 72 saat inkübasyondan sonra ölçüldü.

    Hücre yüzeyi hidrofobikliğinin belirlenmesi
    C. carvi EO'nun C. albicans CSH üzerindeki etkisi , bifazik hidrokarbon-sulu faz yöntemiyle [ 11 ] ölçüldü. Kısaca, 10 ul maya süspansiyonu (106 hücre/ml), C. carvi EO (160 ug/ml) ve flukonazol (2 ug/ml) içeren Sabouraud dekstroz sıvı ortamına aşılandı ve 35°C'de 48 saat inkübe edildi. Daha sonra steril cam test tüplerine 5 ml hücre süspansiyonu eklendi. Ek olarak süspansiyon ortamından bir test ve işlenmemiş bir kontrol hazırlandı ve kör olarak kullanıldı. Bir sonraki aşamada, her test süspansiyonuna 1 ml ksilen ilave edildi.

    Test ve kontroller, dengelenmesi için 10 dakika süreyle 35°C'deki su banyosuna yerleştirildi ve ardından 30 saniye vortekslendi ve 30 dakika daha su banyosuna döndürüldü. Alt sulu faz dikkatli bir şekilde temiz bir test tüpüne aktarıldı. 520 nm'de absorbans, istenmeyen agregatları askıya almak için 5 saniye karıştırıldıktan sonra ölçülmüştür. Negatif kontrol olarak ksilen içermeyen süspansiyon kullanıldı. Hidrofobiklik, kontrol süspansiyonuna kıyasla test süspansiyonunun optik yoğunluğundaki azalma yüzdesi olarak tanımlandı. Hidrofobiklik yüzdesi şu şekilde hesaplandı:

    Hidrofobiklik (%)=[1−(A 1 /A 0 )] × 100

    Hücre zarı ergosterol içeriğinin tahlili
    CME içeriği Jahanshiri ve ark. [ 7 ]. Candida albicans (106 hücre /ml), C. carvi EO (160 ug/ml) ve flukonazol (2 ug/ml) içeren Sabouraud dekstroz sıvı besiyerine aşılandı ve ardından 35ºC'de 72 saat inkübe edildi. Mantar hücreleri 5,000 rpm'de 5 dakika santrifüjleme ile toplandı, distile su ile yıkandı, oda sıcaklığında kurutuldu ve tartıldı. Sonraki aşamada her pelete 3 mL %25 alkollü potasyum hidroksit ilave edildi ve 1 dakika vortekslendi.

    Süspansiyon cam tüplere aktarıldı ve 90°C'de 1 saat su banyosunda inkübe edildi ve oda sıcaklığında soğutuldu. Daha sonra 1 mL distile su ve 3 mL n-heptan ilave edilerek 3 dakika kuvvetlice vortekslendi. 30 dakika sonra heptan tabakası şeffaf cam tüplere aktarıldı ve -20°C'de 24 saat saklandı. Daha sonra 1 mL sterol alikotu, %100 etanol içinde 5 kat seyreltildi ve ultraviyole görünür spektrofotometre (Shimadzu, Japonya) kullanılarak 230-300 nm'de tarandı. Ekstrakte edilen numunede ergosterol ve geç sterol ara ürünü 24(2*) DHE'nin varlığı, karakteristik bir dört tepeli eğri ile sonuçlandı. Ergosterol içeriği, aşağıdaki hesaplama kullanılarak hücrenin ıslak ağırlığının yüzdesi olarak hesaplandı:

    % ergosterol + % 24(28) DHE=[(A281.5/290) × F] /mantar peleti ağırlığı

    %24(28) DHE=(A230/518) × F / mantar pelet ağırlığı

    % ergosterol=% ergosterol + % 24 (28) DHE - % 24 (28) DHE

    burada F, etanol içinde seyreltme faktörüdür ve sırasıyla 290 ve 518, kristalli ergosterol ve 24(28) DHE için belirlenen E değerleridir.

    ERG6 gen ifadesinin belirlenmesi
    C. carvi EO'nun C. albicans'ta ERG6 ekspresyonu üzerindeki etkisini değerlendirmek için, C. carvi EO (160 μg/ml) ve flukonazolün (2 μg/ml) RNX-Plus kiti (Sinacolon, Iran). Ayrıca Jahanshiri ve ark. [ 25 ]. Bu çalışmada kullanılan primerler arasında F: 5'GTGGTGTAGGTGGTCCTGGT 3' ve R: 5' CAATGGCATAAACAGCATCG 3' (ERG), ayrıca F: 5' CCA GCT TTC TAC GTT TCC 3' ve ters: 5' CTG TAA CCA CGT yer almaktadır. TCA GAC 3' (ACT1) [ 26 ]. Gerçek zamanlı kantitatif PCR sistemini kalibre etmek için C. albicans'ın seri dilüsyonlarının (10−1 ila 10−4) standart eğrisi şablon olarak cDNA ile çizilmiştir. Gerçek zamanlı PCR, 10 µl ana karışım (2X), 1 µl primerler (10 mM), 1 µl toplam cDNA numunesi dahil olmak üzere 20 µl'lik son hacimde SYBR yeşil ana karışımı (Applied Biosystems) kullanılarak gerçekleştirildi. ve her reaksiyon için damıtılmış su. Her numune, şablonun miktarı için ẞ-aktin seviyesine normalleştirildireferans gen olarak Deneyler, her numune için üç kopya halinde tekrarlandı. PCR koşulları, ABI PRISM 7500 termal döngüleyici tarafından 95°C'de 10 dakika süreyle bir ilk inkübasyonun yanı sıra 95°C'de 15 saniye, 60°C'de 1 dakika ve 72°C'de 15 saniyelik 40 döngüden oluşuyordu. (Uygulamalı Biyosistemler). ERG6 ifadesinin seviyesini belirlemek için numunelerin ve kalibratörün eşik döngüsü (CT) arasındaki farklar aşağıdaki formül kullanılarak hesaplandı:

    (2 −ΔΔCT )
    istatistiksel analiz
    Tüm veriler, ANOVA testi kullanılarak GraphPad Prism yazılımı, sürüm 6.0'da (Sandiego, CA) analiz edildi ve karşılaştırıldı. 0.05'ten küçük bir p değeri istatistiksel olarak anlamlı kabul edildi.

    Git: Sonuçlar
    Antifungal duyarlılık testi
    C. carvi EO'nun MIC ve MFC değerleri belirlendi ve daha sonra C. albicans'ın standart klinik izolatına karşı flukonazolünkilerle karşılaştırıldı (tablo 1). Sonuçlara göre bitki EO'nun C. albicans'a karşı MIC ve MFC değerleri sırasıyla 320 ve 640 μg/ml idi. Flukonazol için bu değerler sırasıyla 4 ve 8 μg/ml olarak bildirilmiştir. tablo 1


    Candida albicans için Carum carvi esansiyel yağı ve flukonazolün (μg/ml) minimum inhibitör konsantrasyonu ve minimum fungisit konsantrasyonu değerleri
    Esans 20-1280 320 640
    flukonazol 0,5-256 4 8
    Ayrı bir pencerede aç
    MIC: minimum inhibitör konsantrasyon, MFC: minimum fungisidal konsantrasyon

    Proteinaz ve fosfolipaz aktivitelerinin belirlenmesi

    Proteinaz ve fosfolipaz üretimi, C. carvi EO ve flukonazol ile işlenmiş kültürde azalmıştır (rakamlar 1ve​ve 2). bu2). C. carvi EO'da proteinaz ve fosfolipaz aktiviteleri sırasıyla %49.82 ve %53.26 oranında azalırken, flukonazol ile muamele edilmiş kültürlerde sırasıyla %27.72 ve %34.67 oranında inhibe edildi (Tablo 2). Bu değişken açısından tedavi edilen ve kontrol grubu arasında anlamlı bir fark gösterildi ( P <0.05). Sonuçlar, C. carvi EO'nun hem proteinaz hem de fosfolipaz üretimini azaltmada flukonazol kadar etkili olduğunu ortaya koydu.
    Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı cmm-6-30-g001.jpg'dir.
    Şekil 1
    Carum carvi esansiyel yağı (a) ve flukonazol (b) ile tedavi edilen Candida albicans'ta kontrol (c) ile karşılaştırıldığında proteinaz aktivitesi

    Resim, çizim vb. içeren harici bir dosya. Nesne adı cmm-6-30-g002.jpg'dir.
    şekil 2
    Carum carvi esansiyel yağı (a) ve flukonazol (b) ile tedavi edilen Candida albicans'ta kontrol (c) ile karşılaştırıldığında fosfolipaz aktivitesi Tablo 2


    Carum carvi esansiyel yağı ve flukonazol ile muamele edilmiş Candida albicans'ta proteinaz ve fosfolipaz üretimi, hücre yüzeyi hidrofobikliği ve hücre zarı ergosterol içeriğinin belirlenmesi
    C. carvi EO ile işlenmiş 1,43±0,07 49.8 0,93±0,02 53.26 12.75 0,084±0,01 25.74
    Flukonazol ile işlenmiş 2,06±0,05 27.72 1,30±0,08 34.67 20.80 0,064±0,01 43.36
    Kontrol (İşlem görmemiş) 2,85± 0,15 00.00 1,99±0,10 00.00 38.98 0,113±0,01 00.00
    Ayrı bir pencerede aç
    Her biri üç nüsha olan iki deneyin ortalama±SD'sinin sonuçları.

    CSH: hücre yüzeyi hidrofobikliği, CME: hücre zarı ergosterol

    Hücre yüzeyi hidrofobikliğinin belirlenmesi
    C. carvi EO ve flukonazol ile tedavi edilen C. albicans'ın CSH'si,Tablo 2. Sonuçlara göre, C. carvi EO ve flukonazol ile tedavi edilen C. albicans'ın CSH'si, tedavi edilmeyen kontrole kıyasla sırasıyla %12.75 ve %20.80 azaldı. Bu konuda tedavi edilen ve kontrol grupları arasında anlamlı bir fark gösterildi ( P <0.05).

    Hücre zarı ergosterol içeriğinin belirlenmesi
    C. carvi EO- ve flukonazol ile işlenmiş kültürlerdeki C. albicans'ın CME içerikleri sırasıyla 0.084 ve 0.064 µg/g olarak ölçüldü (Tablo 2), tedavi edilen ve kontrol grupları arasında önemli bir fark olduğunu gösterir ( P <0.05). CME, C. carvi EO ve flukonazol ile muamele edilmiş kültürlerde sırasıyla %25.74 ve %43.36 oranlarında inhibe edildi. Sonuçlar, flukonazolün C. albicans'ın ergosterol içeriğini azaltmada C. carvi EO'dan daha etkili olduğunu gösterdi .

    ERG6 gen ifadesinin belirlenmesi
    Ergosterol biyosentezi için bir aracı olarak ERG6 geninin ifadesi, 0.5 x MIC C. carvi EO (160 μg/ml) ve flukonazol (2) ile işlenmiş C. albicans'ta spesifik primerler kullanılarak kantitatif PCR yoluyla incelenmiştir. mg/ml). Amplifikasyon ürünleri ayrıca agaroz jel elektroforezi ile de analiz edildi (Figür 3). ERG6'nın bağıl gen ifadesi , [2 −ΔΔCT ] formülüne göre ölçüldü . C. carvi EO- ve flukonazol ile muamele edilmiş örneklerdeki ERG6 gen ekspresyonu , mRNA seviyesinde yaklaşık 2 kat azaltılmıştır ve bu, muamele edilmemiş kontrol ile karşılaştırıldığında anlamlıdır (Şekil 4; P <0.05). Bu nedenle, hem bitki EO'su hem de flukonazol benzer şekilde ERG6 ekspresyonunu inhibe etti. Bu nedenle, ERG6 ekspresyonunun inhibisyonu açısından EO ve flukonazol ile tedavi edilen numuneler arasında anlamlı bir fark yoktu ( P >0.05).
    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı cmm-6-30-g003.jpg'dir.
    Figür 3
    Tamamlayıcı DNA bantlarının varlığını gösteren gerçek zamanlı polimeraz zincir reaksiyonu ürünü elektroforezi; 1) Carum carvi esansiyel yağı uygulanmış örnek, 2) negatif kontrol (DW), 3) flukonazol uygulanmış örnek, 4) referans gen ACT1 ve 5) DNA merdiveni (100 bp)

    İçinde resim, çizim vb. bulunan harici bir dosya. Nesne adı cmm-6-30-g004.jpg'dir.
    Şekil 4
    Carum carvi esansiyel yağı (160 μg/ml) ve flukonazol (2 μg/mL) ile tedavi edilen Candida albicans'ta mRNA düzeyinde ERG6'nın ifadesi ( P <0.05)

    Git: Tartışma

    Candida albicans , bağışıklığı baskılanmış bireylerde artan sayıda yaşamı tehdit eden enfeksiyonlara neden olan fırsatçı bir mantardır [ 1 , 2 , 27 ]. Fosfolipaz ve proteinaz üretimi ve hidrofobikliğin, C. albicans'ın patogenezi ve virülansında önemli roller oynayabileceği gösterilmiştir [ 3 , 7 , 28 ]. Günümüzde mantar hastalıklarının tedavisinde alternatif olarak kullanılabilecek güçlü antifungal etkilere sahip yeni doğal ürünlerin bulunmasına yönelik birçok araştırma yapılmaktadır. Birçok organik ve doğal bileşiğin C. albicans'a karşı antifungal etkilerini ele alan birkaç çalışma vardır.[ 13 - 17 , 20 , 29 ]. Carum carvi , İran'da 'Kara Zira' olarak bilinir ve geleneksel tıpta birçok terapötik amaç için kullanılmıştır [ 12 , 18 , 19 ].

    Bu çalışmanın amacı, C. carvi EO'nun proteinaz ve fosfolipaz üretimi, CSH, hücre zarı ergosterol içeriği ve ergosterol biyosentezi için bir aracı olarak ERG6 geninin ekspresyonu gibi bazı virülans faktörlerine karşı inhibitör etkilerinin araştırılmasıdır . C. albicans . EO'lar, oldukça farklı konsantrasyonlarda çok sayıda bileşenden oluşan karmaşık doğal karışımlardır. Bu nedenle, antifungal aktiviteyi bu ürünün belirli bir bileşenine bağlamak zordur.

    Carvone (%44.5-95.9) ve limonen (%1.5-51.3) C. carvi EO'nun ana bileşenleri olarak bildirilmiştir . Diğer bileşenler arasında β-mirsen (%0-0,4), trans-dihidrokalkon (%0-0,5), trans-caveolae (%0-0,2), α-pinen, sabinen, n-oktanal, trans-β-ocimene, ve y-terpinen. Ayrıca cuminaldehyde (%22.08), c-terpinene (%17.86), c-terpinene-7-al (%15.41), p-cymene (%7.99), miristisin ve dillapiol C. aureus'un önemli bileşenleri olarak belirlenmiştir . carvi EO [ 21 , 30 , 31 ].

    C. carvi EO'nun antifungal aktivitesi, çok çeşitli mantarlara karşı incelenmiştir [ 20 , 32-37 ] . Carum carvi EO'nun Candida krusei ATCC 6258, Candida parapsilosis ATCC 22019, Aspergillus niger, Aspergillus flavus ve Aspergillus fumigatus'a karşı olağanüstü antifungal aktiviteye sahip olduğu ve C. krusei büyümesine karşı etkili bir inhibisyona (42 mm inhibisyon bölgesi) sahip olduğu bulundu [ 32 ]. carum carvibildirildiğine göre A. parasiticus'ta aflatoksin üretiminin bir inhibitörü olarak hareket eder. Ancak, en yüksek konsantrasyonda bile (1000 μg/ml) mantar büyümesi üzerinde hiçbir etki göstermedi [ 21 ].

    Sonuçlarımız , 320 μg/ml konsantrasyonda C. carvi EO'nun C. albicans'ın büyüme oranını %50 oranında azalttığını gösterdi. Ancak 640 μg/ml konsantrasyonunda bu ürün mantar gelişimini tamamen engellemiştir. Flukonazolün MİK değerleri (4 μg/ml) ile ilgili olarak, C. carvi EO'nunkinden 80 kat daha fazla bir etkiye sahipti ; karışık bir saflaştırılmamış bitki EO'sunun MIC'si. Bu, flukonazolün MİK'si C. carvi EO'nun inhibitör biyoaktif bileşeninin MİK'si ile karşılaştırıldığında bir karşılaştırmanın daha doğru olacağı anlamına gelir .

    Carum carvi EO, mantar hücre zarının bütünlüğünü etkileyen, karvon ve limonen gibi zengin oksijenli bileşikler içerir. Düşük moleküler ağırlıklara sahip oksijenli bileşikler içeren serbest terpen hidrokarbonların, lipofilik moleküller ile birleştikten sonra hücre zarından geçebildikleri gösterilmiştir [ 36 ]. Ayrıca OH grubu ve aromatik yapıya sahip fenolik bileşiklerin fungal enzimlerin deaktivasyonuna katkıda bulunduğu tespit edilmiştir [ 36 ]. Bulgularımız, C. carvi EO'nun C. albicans'ta hücre dışı proteinaz ve fosfolipaz aktivitelerini başarılı bir şekilde inhibe edebildiğini ortaya koydu.. Ayrıca kanıtlara göre proteinaz ve fosfolipaz aktiviteleri C. albicans'ın adezyon ve doku invazyonunda da yer almaktadır [ 4 , 10 ]. Proteinaz ve fosfolipaz aktivitelerinin azalması, bu enzimlerin aktif bölgelerinin C. carvi EO tarafından hedef alınmasının bir sonucu olarak kabul edilebilir .

    Patel ve ark. ham bir Dodonaea viscosa özütünün, C. albicans'ta proteinaz ve fosfolipaz aktivitelerini inhibe edemediğini gözlemledi . Bununla birlikte, ekstrakttaki fitosterol ve tanenlerin varlığı, hücre duvarı hasarı da dahil olmak üzere kapsamlı hücresel hasara neden olmuş olabilir [ 9 ]. Bir mantarın bir EO'nun antifungal aktivitesine duyarlılığının veya direncinin, ana bileşiklerinin kapasitesine bağlı olduğu ortaya çıktı. Bu çalışmada, C. carvi EO'nun (0.5×MIC) varlığı flukonazole benzer şekilde CSH'de önemli bir azalmaya neden olmuştur.

    Ergosterol, mantar hücre zarının ana parçalarından biridir ve mantar önleyici ilaçlar için ana hedef olduğu bildirilmektedir. Ergosterol biyosentezine, ERG6'nın önemli bir gen olduğu ERG gen ailesi aracılık eder. Bu gen, ergosterol biyosentez yolunda zimosterol'ü fekosterole dönüştüren C-24 metiltransferazı kodlar. ERG6 geni, C. albicans'ta hücre zarının normal işlevi için gereklidir ; bu nedenle, bu genin mutasyonu ilaçların antifungal aktivitelerini inhibe edebilir [ 37 ]. Mevcut çalışmada, C. carvi EO'nun (160 μg/ml) 0,5 kat MİK konsantrasyonunda CME içeriği %25,74'e düşürülmüştür . Ayrıca ERG6 ifadesiaynı konsantrasyonda mRNA düzeyinde yaklaşık 2 kat azalmıştır.

    İşlevsel bir sterol metiltransferazın yokluğu, eksojen bileşiklere karşı hücre aşırı duyarlılığını indükleyebileceğinden, ERG6 gen ekspresyonunun inhibisyonu, yeni veya mevcut antifungallerin gücünü artırabilir. Bu nedenle, mevcut çalışmada tanıtılan C. carvi EO gibi ERG6 gen ürününün doğal inhibitörleri, kandidiyazisin daha düşük bir dozajda daha güvenli bir şekilde klinik tedavisine izin verir [ 26 ]. Öte yandan, C. carvi EO'nun , azol antifungal ajanların [39] hepatotoksik etkilerinden sorumlu olan sitokrom P450 1A1'in (CYP1A1) transkripsiyon seviyesinde [ 38 ] ekspresyonunu baskıladığı gösterilmiştir [ 39 ].

    Git: Çözüm

    Bulguların gösterdiği gibi, C. carvi EO , C. albicans'ta ergosterol biyosentezinde çok önemli bir gen olan ERG6 genini baskılayabilir ve ekzoenzimler , hücre zarı hidrofobikliği ve CME içeriği dahil olmak üzere mantarın ana hastalık oluşturma faktörlerini etkili bir şekilde inhibe edebilir. C. carvi EO'nun ana antifungal bileşenleri, C. albicans'ın neden olduğu mantar enfeksiyonlarını yönetmek için mantar önleyici ilaç formülasyonları için doğal alternatifler olarak yararlı olabilir .

    Git: Teşekkür

    Bu çalışma, Tahran, İran'daki Tarbiat Modares Üniversitesi Araştırma Görevlisi tarafından finansal olarak desteklenmiştir. Yazarın katkısı MSG projeyi yönetti ve el yazmasının ilk taslağını yazdı, MRA mantar suşu ve EO'yu hazırladı ve deneyleri SN gerçekleştirdi. Tüm yazarlar makalenin son halini onayladı.

    Yazarın katkısı
    MSG projeyi yönetti ve el yazmasının ilk taslağını yazdı, MRA mantar suşu ve EO'yu hazırladı ve deneyleri SN gerçekleştirdi. Tüm yazarlar makalenin son halini onayladı.

    Çıkar Çatışması: Herhangi bir çıkar çatışması beyan edilmemiştir. Mali açıklama: Bu el yazmasının malzemesiyle ilgili herhangi bir mali çıkar beyan edilmemiştir.

    Mali açıklama: Bu el yazmasının malzemesiyle ilgili herhangi bir mali çıkar beyan edilmemiştir.

    Git: Referanslar

    1. Costa-de-Oliveira S, Rodrigues AG. Candida albicans antifungal direnci ve kan dolaşımı enfeksiyonlarında tolerans: üçlü maya-konakçı-antifungal. mikroorganizmalar. 2020; 8 (2):E154. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    2. Chin VK, Lee TY, Rusliza B, Chong PP. Candida albicans enfeksiyonunu C. albicans virülansı açısından incelemek ve konak-patojen etkileşimi üzerine omik yaklaşımlar: Bir Gözden Geçirme. Int J Mol Sci. 2016; 17 (10):E1643. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    3. Sardi JC, Scorzoni L, Bernardi T, Fusco-Almeida AM, Mendes Giannini MJ. Candida türleri: mevcut epidemiyoloji, patojenite, biyofilm oluşumu, doğal antifungal ürünler ve yeni terapötik seçenekler. J Med Microbiol. 2013; 62 (Bölüm 1):10–24. [ PubMed ] [ Google Akademik ]
    4. Sadeghi G, Mousavi SF, Ebrahimi-Rad M, Ardakani E, Eslamifar A, Shams-Ghahfarokhi M, et al. Kutanöz kandidiyazisten izole edilen Candida albicans suşlarının in vivo ve in vitro patogenezi ve virülans faktörleri. İran Biomed J. 2020; 25 :257–66. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    5. Yu Q, Zhang B, Ma F, Jia C, Xiao C, Zhang B ve diğerleri. Candida albicans büyümesine ve morfogenezine karşı sürfaktanların yeni mekanizmaları. Chem Biol Interact. 2015; 227 :1–6. [ PubMed ] [ Google Akademik ]
    6. Marcos-Zambrano L, Escribano P, Bouzaa E, Guineaa J. Candida ve Candida olmayan türlerle biyofilm üretimi. fungemiye neden olan izolatlar: biyokütle üretiminin ve metabolik aktivitenin karşılaştırılması ve kesme noktalarının geliştirilmesi. Int J Med Microbiol. 2014; 304 (8):1192–8. [ PubMed ] [ Google Akademik ]
    7. Jahanshiri Z, Shams-Ghahfarokhi M, Asghari-Paskiabi F, Saghiri R, Razzaghi-Abyaneh M. α-Bisabolol, ergosterol biyosentez yolunda çok önemli bir enzim olarak mikrozomal ∆24-sterol metiltransferazı etkileyerek Aspergillus fumigatus Af239 büyümesini inhibe eder. Dünya J Microbiol Biotechnol. 2017; 33 (3):55. [ PubMed ] [ Google Akademik ]
    8. Khan M, Ahmad I. Candida albicans biyofilmlerine karşı belirli bitki bileşiklerinin antibiyofilm aktivitesi ve bunların flukonazol ile sinerjisi. J Antimikrob Kemoterapi. 2012; 67 (3):618–21. [ PubMed ] [ Google Akademik ]
    9. Patel M, Gulube Z, Dutton M. Dodonaea viscosa var. Candida albicans proteinaz ve fosfolipaz üretimi ve oral epitel hücrelerine yapışma üzerindeki angustifolia. J Etnofarmakoller. 2009; 124 (3):562–5. [ PubMed ] [ Google Akademik ]
    10. Consolaro ME, Gasparetto A, Svidzinski TI, Peralta RM. Üç farklı klinik durumda hastaların vajinal ortamından izole edilen Candida albicans suşlarının virülans faktörlerine pepstatin A'nın etkisi. Mikopatoloji. 2006; 162 (2):75–82. [ PubMed ] [ Google Akademik ]
    11. Dabiri S, Shams-Ghahfarokhi M, Razzaghi-Abyaneh M. Klinik örneklerden izole edilen Candida türlerinde proteinaz, fosfolipaz, hidrofobiklik ve biyofilm oluşturma yeteneğinin karşılaştırmalı analizi. J Mycol Med. 2018; 28 (3):437–42. [ PubMed ] [ Google Akademik ]
    12. Razzaghi-Abyaneh M, Shams-Ghahfarokhi M, Rai M. İran'ın antifungal bitkileri: Bitkilerden Antifungal Metabolitlerde ekoloji, kimya ve moleküler biyolojiye bir bakış. Berlin: Springer; 2013P. 27-57. [ Google Akademik ]
    13. Shams-Ghahfarokhi M, Shokoohamiri MR, Amirrajab N, Moghadasi B, Ghajari A, Zeini F, et al. Bazı patojenik mayalara ve dermatofitlere karşı Allium cepa, Allium sativum ve ketokonazolün in vitro antifungal aktiviteleri. Fitoterapi. 2006; 77 (4):321–3. [ PubMed ] [ Google Akademik ]
    14. Alves M, Gonçalves MJ, Zuzarte M, Alves-Silva JM, Cavaleiro C, Cruz MT, et al. İki iberya kekiği esansiyel yağının antifungal potansiyelini ortaya çıkarmak: C. albicans mikrop tüpü ve önceden oluşturulmuş biyofilmler üzerindeki etki. Ön Eczacılık. 2019; 10 :446. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    15. Serra E, Hidalgo-Bastida LA, Verran J, Williams D, Malic S. Candida albicans'a karşı ticari uçucu yağların ve biyositlerin antifungal aktivitesi. patojenler. 2018; 7 (1):E15. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    16. Freire JC, Júnior JK, Silva DF, de Sousa JP, Guerra FQ, de Oliveira Lima E. Uçucu yağların diş protezi kullanıcılarından izole edilen Candida albicans suşlarına karşı antifungal etkinliği. Kanıta Dayalı Tamamlayıcı Alternatif Med. 2017; 2017 :7158756. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    17. Hassanpour P, Shams-Ghahfarokhi M, Razzaghi-Abyaneh M. Öjenolün Cryptococcus neoformans biyolojik aktivitesine ve Cxt1p gen ekspresyonuna karşı antifungal aktivitesi. Curr Med Mycol. 2020; 6 (1):9–14. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    18. Baharatlar ve çeşniler (yetiştirme, işleme ve ekstraksiyon) hakkında Panda H. El Kitabı. Yeni Delhi, Hindistan: Asia Pacific Business Press Inc; 2010. [ Google Akademik ]
    19. Grigore A, Colceru-Mihul SV, Paraschiv I, Nita SU, Christof RA, Iuksel RA, et al. Yerli tıbbi türlerin uçucu yağlarının kimyasal analizi ve antimikrobiyal aktivitesi. Roman Biyoteknoloji Lett. 2012; 17 (5):7620–7. [ Google Akademik ]
    20. Nasiri S, Shams-Ghahfarokhi M, Razzaghi-Abyaneh M. Carum carvi esansiyel yağlarının Candida albicans'ın büyümesi üzerindeki inhibitör etkisi. Sci J Mikrob. 2014; 3 (7):74–7. [ Google Akademik ]
    21. Razzaghi-Abyaneh M, Shams-Ghahfarokhi M, Rezaee MB, Jaimand K, Alinezhad S, Saberi R, et al. Carum carvi L. , Thymus vulgaris ve Citrus aurantifolia esansiyel yağlarının kimyasal bileşimi ve antiaflatoksijenik aktivitesi. Gıda Kontrolü. 2009; 20 (11):1018–24. [ Google Akademik ]
    22. Klinik ve Laboratuvar Standartları Enstitüsü. Mayaların et suyu dilüsyon antifungal duyarlılık testi için referans yöntemi. CLSI standardı M27-A4. 4. baskı Wayne, PA: Klinik ve Laboratuvar Standartları Enstitüsü; 2017 . [ Google Akademik ]
    23. Fiyat MF, Wikinson Kimliği, Gentry LO. Candida albicans'ta fosfolipaz aktivitesinin saptanması için plaka yöntemi. Sabouraudia. 1982; 20 (1):7–14. [ PubMed ] [ Google Akademik ]
    24. Samaranayake YH, Dassanayake RS, Jayatilake JA, Chgeung BP, Yau JY, Yeung KW, et al. Fosfolipaz B enzimi, insan immün yetmezlik virüsü enfeksiyonu olan hastalardan izole edilen Candida albicans izolatlarında diğer virülans özellikleri ile ilişkili değildir. J Med Microbiol. 2005; 54 (6):583–93. [ PubMed ] [ Google Akademik ]
    25. Jahanshiri Z, Shams-Ghahfarokhi M, Allameh A, Razzaghi-Abyaneh M. Aspergillus parasiticus'ta öjenolün aflatoksin B1 üretimi üzerindeki inhibitör etkisi, toksin biyosentetik yolundaki ana genlerin ekspresyonunu aşağı doğru düzenleyerek. Dünya J Microbiol Biotechnol. 2015; 31 (7):1071–8. [ PubMed ] [ Google Akademik ]
    26. Jensen-Pergakes KL, Kennedy MA, Lees ND, Barbuch R, Koegel C, Bard M. Candida albicans sterol metiltransferaz (ERG6) geninin sekanslanması, bozulması ve karakterizasyonu: ERG6 mutantlarında ilaç duyarlılık çalışmaları. Antimikrob Ajanlar Chemother. 1998; 42 (5):1160–7. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    27. Razzaghi-Abyaneh M, Shams-Ghahfarokhi M, Rai M. Tıbbi mikoloji: mevcut eğilimler ve gelecekteki beklentiler. Florida: CRC Basın; 2015. S. 442. [ Google Scholar ]
    28. Pakshir K, Zomorodian K, Karamitalab M, Jafari M, Taraz H, Ebrahimi H. Candida türlerinin fosfolipaz, esteraz ve hemolitik aktiviteleri. onikomikoz ve oral liken planus lezyonlarından izole edilmiştir. J Mycol Med. 2013; 23 (2):113–8. [ PubMed ] [ Google Akademik ]
    29. Razzagh-parast A, Shams Ghahfarokhi, Yadegari MH, Razzaghi Abyaneh M. Allium cepa ve bazı azollerin bozulmamış formlarda ve birbirleriyle kombinasyon halinde patojenik mayalara karşı antifungal etkileri. Kowsar Med J. 2008; 13 (2):103–13. [ Google Akademik ]
    30. Nehiri M, Aouane EM, Tarfaoui K, Choukri S, Chaib Y, Inekach S, et al. Carum Carvi L.essential yağının antibakteriyel aktivitesinin değerlendirilmesi. Am J Innovat Res Appl Sci. 2017; 5 (6):67–70. [ Google Akademik ]
    31. Razzaghi-Abyaneh M, Yoshinari T, Shams-Ghahfarokhi M, Rezaee MB, Nagasawa H, Sakuda S. Aspergillus parasiticus'ta aflatoksin G1'in biyosentezinin spesifik inhibitörleri olarak dillapiol ve apiol. Biosci Biotechnol Biochem. 2007; 71 (9):2329–32. [ PubMed ] [ Google Akademik ]
    32. İbrahim GS, Kiki MJ. Bazı baharat esansiyel yağlarının kimyasal bileşimi, antifungal ve antioksidan aktivitesi. Int J Life Sci İlaç Arş. 2020; 10 (1):L43–50. [ Google Akademik ]
    33. Iacobellis N, Cantore P, Capasso F, Felice S, Cuminum cyminum L. ve Carum carvi esansiyel yağlarının antibakteriyel aktivitesi. J Tarım Gıda Kimyası 2005; 53 (1):57–61. [ PubMed ] [ Google Akademik ]
    34. Begum J, Bhuiyan MN, Chowdhury JU, Hoque MN, Anwar MN. Carum carvi tohumlarından elde edilen uçucu yağın antimikrobiyal aktivitesi ve bileşimi. Bangladeş J Microbiol. 2008; 25 (2):85–9. [ Google Akademik ]
    35. Siripornvisal S, Thawornluk P, Rungprom W. 6 Umbelliferae'den elde edilen ham özlerin antifungal aktivitesi ve aktif bileşenleri için tarama. Agric Sci J. 2011; 42 (2):361–4. [ Google Akademik ]
    36. Ben Salha G, Herrera Díaz R, Lengiz O, Abderrabba M, Labidi J. Serbest terpen hidrokarbon esansiyel yağlarının kimyasal bileşiminin antifungal aktivite üzerindeki etkisi. moleküller. 2019; 24 (19):E3532. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    37. Sanglard D, Ischer F, Parkinson T, Falconer D, Bille J. Candida albicans mutasyonları ergosterol biyosentetik yolunda ve birkaç antifungal ajana direnç. Antimikrob Ajanlar Chemother. 2003; 47 (8):2404–12. [ Ücretsiz PMC makalesi ] [ PubMed ] [ Google Scholar ]
    38. Naderi-Kalali B, Allameh A, Rasaee MJ, Bach HJ, Behechti A, Doods K, et al. Kimyon (Carum carvi) özlerinin, sıçan H4IIE hücrelerinde sitokrom P450 1A1'in 2, 3, 7, 8-tetrakloro-dibenzo-p-dioksin bağımlı gen ekspresyonu üzerindeki baskılayıcı etkileri. Vitro'da toksikol. 2005; 19 (3):373–7. [ PubMed ] [ Google Akademik ]
    39. Korashy HM, Shayeganpour A, Brocks DR, El-Kadi AO. Ketokonazol ve itrakonazol tarafından sitokrom P450 1A1 indüksiyonu, ancak murin ve insan hepatom hücre hatlarında flukonazol tarafından değil. Toksikol Sci. 2007; 97 (1):32–43. [ PubMed ] [ Google Akademik ]
    Bitkisel ürünler |Bitkisel İlaçlar |Alternatif Tıp | Doğal Tedavi | Gökçek Şifa | Hastalıklarla İlgili Bilgiler
    Youtube Kanalımızı Takip Edin | Facebok Sayfamızı Takip Edin

    Yorum yap


    • #3
      Chemical composition and antiaflatoxigenic activity of Carum carvi L., Thymus vulgaris and Citrus aurantifolia essential oils

      Author links open overlay panelMehdi Razzaghi-Abyaneh a, Masoomeh Shams-Ghahfarokhi b, Mohammad-Bagher Rezaee c, Kamkar Jaimand c, Soheil Alinezhad d, Reza Saberi d, Tomoya Yoshinari e
      Show more
      Add to Mendeley
      Share
      Cite
      https://doi.org/10.1016/j.foodcont.2008.12.007Get rights and content a Department of Mycology, Pasteur Institute of Iran, Tehran 13164, Iran b Department of Mycology, Faculty of Medical Sciences, Tarbiat Modares University, Tehran 14115-331, Iran c Department of Medicinal Plants, Institute for Research in Forests and Rangelands, Tehran, Iran d Institute of Applied Science and Technology, Jahad-e-Agriculture, Tehran, Iran e Department of Applied Biological Chemistry, Graduate School of Agricultural and Life Sciences, The University of Tokyo, 1-1-1 Yayoi, Bunkyo, Tokyo 113-8657, Japan

      Abstract
      Aflatoksin (AF) üretimini kontrol etmede faydalı bitkileri bulmak için, hidrodistilasyonla hazırlanan 12 şifalı bitkiden elde edilen uçucu yağlar (EO'lar), Aspergillus parasiticus büyümesinin ve AF üretiminin inhibisyonuna özel referansla incelenmiştir. Toksijenik mantar, bir mikrobiyoanaliz tekniği kullanılarak 6 oyuklu mikroplakalarda çeşitli yağların varlığında kültürlendi. Aflatoksinler Bı (AFBı) ve Gı (AFGı) yüksek performanslı sıvı kromatografisi (HPLC) ile ölçülürken, misel kütlesi mantar büyümesinin bir indeksi olarak tahmin edilmiştir . Test edilen bitkiler arasında Thymus vulgari ve Citrus aurantifolia'nın her ikisini de inhibe ettiği bulundu.A. parasiticus ve AF üretimi. Mentha spicata L., Foeniculum miller , Azadirachta indica A. Juss, Conium maculatum ve Artemisia dracunculus'tan elde edilen EO'lar , yalnızca mantar gelişimini inhibe ederken, Carum carvi L., mantar büyümesi üzerinde herhangi bir belirgin etki olmaksızın AF üretimini etkili bir şekilde inhibe etti. Ferula gummosa , Citrus sinensis , Mentha longifolia ve Eucalyptus camaldulensis dahil diğer bitkiler, kullanılan tüm konsantrasyonlarda A. parasiticus büyümesi ve AF üretimi üzerinde hiçbir etkiye sahip değildi . IC50 değerleri _AF inhibisyonu için T. vulgaris , C. aurantifolia ve C. carvi AFB 1 için 93.5, 285.6 ve 621.9 μg/ml olarak bildirilirken , AFG 1 için 11.7, 50.1 ve 56.0 μg/ml olarak hesaplandı . Bu sonuçlar, bazı tıbbi bitkilerin EO'larının gıdaları ve yemleri toksijenik mantar büyümesinden ve müteakip AF kontaminasyonundan korumak için potansiyel adaylar olarak kabul edilebileceğini göstermektedir.

      giriiş
      Aflatoksinler (AF'ler), esas olarak Aspergillus bölümü Flavi'nin bazı üyeleri tarafından üretilen önemli bir gıda kirletici grubudur.uygun sıcaklık ve bağıl nem koşulları altında. Aflatoksijenik Aspergilli, enfektif propagüller olarak hava kaynaklı konidilere sahip kozmopolit mantarlar olduğundan, rutin olarak tüm dünyada yer fıstığı, mısır, antep fıstığı ve yağlı tohumlar gibi gıdaları, yemleri ve tarımsal ürünleri kontamine ederler (Payne, 1998). Gıdaların AF kontaminasyonunun, insanlarda ve çeşitli deneysel hayvan modellerinde başlıca hepatoselüler karsinoma gibi karaciğer hasarı gibi mikotoksikozların bazı özellikleriyle iyi ilişkili olduğu bildirilmiştir (Bhatnagar & Garcia, 2001). Bu nedenle AF ile kontamine olmuş gıda ve yemlerin tüketimi sadece halk sağlığı açısından değil ekonomik kayıplar açısından da ciddi bir sorundur.

      Gıda kaynaklı patojenlerin hızla genişleyen listesi ile ilgili olarak, bu tehlikeli organizmalarla gıda kontaminasyonunu önlemek için yeni stratejilerin araştırılması acil bir ihtiyaçtır. Gıda koruyucu olarak rutin olarak kullanılan kimyasal bileşikler, insan ve hayvan sağlığı için bazı yönlerden zararlı olabilir. Bu nedenle, birçok araştırmacı, ökaryotik sistemler için daha düşük toksisiteye sahip doğal kaynaklardan daha güvenli ve daha etkili bileşikleri bulmak için dahil olmuştur. AF'lerin ekinlere bulaşmasını kontrol etmek için farklı stratejiler kullanılmış olsa da (Cleveland ve Bhatnagar, 1992, Philips ve diğerleri, 1994), bilim adamları arasında genel olarak kabul edilen etkili bir yöntemin olmaması nedeniyle sorunu aşmak zordur.

      Bitkiler, faydalı metabolitlerin eşsiz kaynakları olarak kabul edilir. Bitki esansiyel yağları (EO'lar), farklı patojenik organizma gruplarına karşı geniş bir antimikrobiyal etki yelpazesine sahip olmalarıyla ilgili önemli değerlendirmeler aldı (Bakkali ve diğerleri, 2008, Burt, 2004, Shams-Ghahfarokhi ve diğerleri, 2006, Webster ve diğerleri. , 2008). Seçilen EO'lar, Birleşik Devletler Gıda ve İlaç İdaresi (FDA) tarafından onaylı aromalar veya gıda katkı maddeleri olarak genel olarak güvenli (GRAS) olarak sınıflandırılmıştır (Burt, 2004, Kabara, 1991). Bu nedenle, antimikrobiyal aktiviteye sahip EO'lar, mikrobiyal gıda kontaminasyonlarını kontrol etmek için doğal antimikrobiyal koruyucular olarak kullanım için olası adaylardır. Yapraklardan, köklerden ve tohumlardan hazırlanan EO'lar ve özler dahil olmak üzere farklı bitki müstahzarları, güçlü büyüme ve/veya AF üretimi inhibitörleri olarak başarılı bir şekilde kullanılmıştır.Aspergillus flavus ve Aspergillus parasiticus (Mahmoud, 1994, Mahoney ve Molyneux, 2004, Rasooli ve Razzaghi-Abyaneh, 2004, Razzaghi-Abyaneh ve diğerleri, 2005). Bu bitkiler, tarla koşullarında mahsullerin AF kontaminasyonunu kontrol etmek için faydalı olabilir.

      Doğal mantar büyümesi kaynakları ve/veya AF üretim inhibitörleri araştırmamıza devam ederken, 6 ana familyadan 12 tıbbi bitkinin EO'ları, A. parasiticus tarafından büyümeyi ve AF'lerin (AFB 1 ve AFG 1 ) üretimini inhibe etme yetenekleri açısından değerlendirildi . NRRL 2999.

      Bölüm snippet'leri
      Mantar suşu, büyüme ortamı ve kimyasallar
      Çalışma boyunca AF B ve G serilerinin bilinen bir üreticisi olan A. parasiticus NRRL 2999 kullanıldı. Mantar, spor süspansiyonu hazırlamak için Sabouraud Dextrose Agar (E. Merck, Almanya) üzerinde kültürlendi. Difco TM Potato Dextrose Broth (Bekton, Dickinson and Company Sparks, MD 21152 ABD), mantar tarafından AF üretimi için kullanılan kültür ortamıydı. Tüm çözücüler ve reaktifler, uluslararası şirketlerden hazırlanmış analitik saflıktaydı.

      Bitki materyalleri ve EO'ların hazırlanması ( Rasooli & Razzaghi-Abyaneh, 2004 )
      Tablo 1'de belirtildiği gibi, altı bitki türünden 12 bitki türü bitki özellikleri
      Bu çalışmada kullanılan bitkilerin genel özellikleri Tablo 1'de gösterilmiştir. Altı farklı familyadan toplam 12 bitki antifungal aktiviteleri açısından incelenmiştir. Tablo 1'de gösterildiği gibi, bitki türleri, A. parasiticus büyümesini ve/veya AF üretimini baskılama yeteneklerine göre aşağıdaki şekilde 4 farklı grupta sınıflandırılmıştır : (i) büyüme ve Thymus vulgaris ve Citrus aurantifolia dahil AF inhibitörleri (ii) sadece büyüme Mentha spicata , Conium dahil olmak üzere inhibitörler

      Tartışma
      1960'larda AF'lerin keşfinden bu yana, mikolojiden biyokimyaya ve moleküler genetiğe, bu ilginç mantar metabolitlerinin biyosentetik mekanizmasının aydınlatılmasında hızlı ilerlemeler kaydedilmiştir. AF biyosentezi , mantar kromozomunda 75 kb'lik bir bölgede yer alan 25'ten fazla kümelenmiş genin katılımıyla çok karmaşık bir süreci içeren en iyi tanımlanmış ikincil metabolizma yollarından biri olarak kabul edilmektedir (Ehrlish ve diğerleri, 2005, Yu ve diğerleri, 2004). Büyük verilere rağmen şimdi var

      teşekkürler
      Bu çalışma İran Pasteur Enstitüsü tarafından mali olarak desteklenmiştir (Proje No. 354). Yazarlar, faydalı yorumları ve önerileri için Tokyo Üniversitesi Uygulamalı Biyolojik Kimya Bölümünden Profesör Hiromichi Nagasawa ve Dr.

      Referanslar (25)

      Yorum yap


      • #4
        Carum carvi'den İzole Edilen Bitki Bazlı Yeni Bir Antifungal Peptit Cc-AFP1'in Karakterizasyonu, Biyolojik Aktivitesi ve Etki Mekanizması

        Sima Sadat Seyedjavadi , 1 Soghra Khani , 1 Mehdi Goudarzi , 2 Hadi Zare-Zardini , 3 , 4 Masoomeh Shams-Ghahfarokhi , 5 Fatemehsadat Jamzivar , 1 ve Mehdi Razzaghi-Abyaneh 1 , *
        Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi İlişkili Veriler

        Veri Kullanılabilirliği Bildirimi
        Git: Soyut


        Artan invaziv mantar enfeksiyonları oranı ve ortaya çıkan antifungal direnç nedeniyle, yeni antifungal ilaçların geliştirilmesi acil bir gereklilik olmuştur. Antifungal peptitler (AFP'ler), ilaca dirençli mantar patojenlerinden kurtulma konusundaki benzersiz yetenekleri nedeniyle son zamanlarda dikkatleri üzerine çekmiştir. Bu çalışmada, moleküler ağırlığı ~3.759 kDa olan yeni bir AFP, Cc-AFP1, Carum carvi L.'den izole edildi, amonyum sülfat çökeltmesi ve ters fazlı HPLC ile saflaştırıldı ve son olarak Edman degradasyonu kullanılarak sekans analizi ile tanımlandı. Peptit dizisi analizi, Cc-AFP1 için +5 net yük ve %38 hidrofobiklik oranı ile RVCFRPVAPYLGVGVSGAVRDQIGVKLGSVYKGPRG olarak 36 amino asit kalıntısının bir parçasını ortaya çıkardı. Cc-AFP1'in antifungal aktivitesi Aspergillus'a karşı doğrulandı. MIC değerleri 8–16 µg/ml aralığında olan türler. Cc-AFP1, insan kırmızı kan hücrelerinde 8-16 µg/ml'de %5'ten daha az hemolitik aktiviteye sahipti ve HEK293 hücre hattına karşı belirgin bir sitotoksisiteye sahip değildi. Stabilite analizi, Cc-AFP1 aktivitesinin farklı sıcaklıklarda (20°C ila 80°C) ve pH'ta (8 ila 10) muhafaza edildiğini gösterdi. Bir propidyum iyodür alımı ve transmisyon elektron mikroskobunun sonuçları, Cc-AFP1'in antifungal aktivitesinin, mantar hücre zarı geçirgenliğindeki değişikliğe atfedilebileceğini gösterdi. Birlikte ele alındığında bu sonuçlar, Cc-AFP1'in Aspergillus türlerinin neden olduğu mantar enfeksiyonlarıyla mücadele eden yeni bir mantar önleyici madde olarak geliştirmek için çekici bir molekül olabileceğini göstermektedir .

        Anahtar Kelimeler: antifungal peptit, Aspergillus fumigatus , Carum carvi , sitotoksisite, etki mekanizması, mantar enfeksiyonları, elektron mikroskobu, ilaç keşfi
        Git: giriiş


        Son yirmi yılda, yüksek morbidite ve mortaliteye yol açan, hayatı tehdit eden mantar enfeksiyonlarının prevalansında bir artış olmuştur ( Firacative, 2020 ). Ayrıca, bağışıklığı baskılanmış hastaların artan oranı, daha ciddi mantar enfeksiyonlarının gelişmesine yol açmıştır ( Armstrong-James ve diğerleri, 2014 ; Pathakumari ve diğerleri, 2020 ). Tüm dünyada yılda iki milyondan fazla insan istilacı mantar hastalıklarından etkilenirken, mantar hastalıkları her yıl tüberküloz veya sıtmaya kıyasla daha fazla ölüme neden oluyor ( Bongomin ve diğerleri, 2017 ). Mantar hastalıklarının küresel tahminleri, küresel olarak yıllık 300.000 invaziv aspergilloz vakası ve üç milyondan fazla kronik pulmoner aspergilloz vakası olduğunu göstermektedir. Banerjee ve diğerleri, 2021 ). %80'den fazla ölüm oranına sahip invaziv aspergilloz, başlıca A. fumigatus'un neden olduğu en önemli nozokomiyal mantar enfeksiyonlarından biridir ve ardından ikinci etiyolojik ajan olarak A. flavus gibi diğer bazı Aspergillus'lar gelir ( De Cesare ve ark., 2020 ). Artan mantar enfeksiyonları oranına ve etkili antifungal ilaçların sınırlı mevcudiyetine rağmen, son yıllarda piyasaya yalnızca birkaç yeni antifungal geliştirilmiştir. Ortaya çıkan antifungal ilaç direnci, yeni antifungal molekül geliştirme ihtiyacını da güçlendiriyor ( Chowdhary ve diğerleri, 2017 ; Fernández de Ullivarri ve diğerleri, 2020). İdeal olarak, yeni antifungal ajanlar geniş spektrumlu bir aktiviteye sahip olmalı, mantar türleri arasında çapraz direnç olmaksızın çoklu etki mekanizmaları ile hedefe özel olmalıdır. Tıbbi özelliklere sahip doğal olarak oluşan biyoaktif bileşikler arasında, antimikrobiyal peptitler (AMP'ler), güçlü antimikrobiyal aktiviteleri ve basit yapıları nedeniyle artan ilgiyi artırdı ( Cruz ve diğerleri, 2014 ).

        Bu bağlamda, bitkiler ve mikroorganizmalar gibi doğal kaynaklardan elde edilen antifungal peptitler (AFP'ler), yüksek seçicilik ve etkinlik, düşük immünojeniklik ve konakçı organlara ve dokulara iyi penetrasyon dahil olmak üzere çeşitli avantajlar nedeniyle son yıllarda terapötik ajanlar olarak artan ilgi görmüştür. ( Denning ve Bromley, 2015 ). Antifungal peptidler, kaynağa, yapıya ve etki tarzına göre sınıflandırılan çeşitli gruplardır ( Cruz ve diğerleri, 2014 ; Fernández de Ullivarri ve diğerleri, 2020 ). Doğal AFP'ler, omurgalı ve omurgasız hayvanlar, bitkiler ve mikroorganizmalar gibi birçok organizma tarafından üretilir ve hidrofobik veya amfipatik özelliklere sahip doğrusal veya döngüsel bir yapıya sahiptir ( Silva ve diğerleri, 2014 ;Tam ve diğerleri, 2015 ; Faruk ve diğerleri, 2016 ). Etki mekanizmasına bağlı olarak antifungal peptitler, hücre zarı ve hücre içi hedefleme peptitlerine ayrılır ( Lécorché ve diğerleri, 2012 ; Li ve diğerleri, 2017 ).

        Yeni antifungal peptitlerin saflaştırılması ve tanımlanması, mevcut yenilikçi terapiler ve insan mantar patojenlerinin yönetimi çağında her zaman ilgi çekici olmuştur ( Meneguetti ve diğerleri, 2017 ). Bitkiler, yeni antifungal terapötiklerin geliştirilmesinde kullanılma potansiyeline sahip çok çeşitli AFP'ler üretir ( Campos ve diğerleri, 2018 ). Bu peptidler, sistein açısından zengindir ve tohumlarda yaygın olarak bulunur ve amino asit dizisi homolojisine dayalı olarak, birkaç sınıf içerir ( De Lucca, 2000 ).

        Carum carvi L. (Kimyon), Umbelliferae familyasına ait tek yıllık otsu bir bitkidir. Bitki, İran'ın bazı belirli bölgelerine özgüdür ve gıdalarda ve bitkisel ilaçlarda kullanılmaktadır ( Razaghi-Abyaneh ve diğerleri, 2009 ; Panda, 2010 ; Nasiri ve diğerleri, 2020 ). Bildiğimiz kadarıyla, C. carvi kaynaklı AFP'ler hakkında çok az şey belgelenmiştir . Bu çalışmada, insan ve hayvan patojenik Aspergillus türlerine karşı güçlü antifungal aktivite gösteren, ancak insan kırmızı kan hücrelerine karşı belirgin bir sitotoksisiteye sahip olmayan bir a-heliks ve rastgele sarmal yapısına sahip C. carvi tohumlarından yeni bir AFP izole ettik ve karakterize ettik. ve HEK293 hücre hattıin vitro .

        Git: Malzemeler ve yöntemler

        Mantar Suşu ve Carum carvi
        Carum carvi tohumları , Tahran, İran'daki Ormanlar ve Meralar Araştırma Enstitüsü'nün herbaryumundan hazırlandı. Temiz su ile yıkandıktan sonra oda sıcaklığında kurutuldu. A. fumigatus PFCC 50091, A. niger ATCC 9142 ve A. flavus PFCC 50041 dahil olmak üzere Aspergillus türleri İran Pasteur Enstitüsünün Patojenik Mantar Kültürü Koleksiyonu tarafından sağlanmıştır ( //fa.pasteur.ac.ir/VisitDetails. aspx?Id=1311 ). Suşlar, -70°C'de %20 gliserol içeren Sabouraud dekstroz sıvı besiyerinde (SDB, Merck, Almanya) saklandı. Suşlar, Sabouraud dekstroz agarda (SDA, Merck, Almanya) alt kültürlendi.

        Peptit Ekstraksiyonu ve Saflaştırma
        Kısaca, Carum carvi tohumları ince bir un olacak şekilde öğütüldü ve toplam protein, bir özütleme tamponu (100 mM KCI, 15 mM NaH2P04, 10 mM Na2HP04 ve % 1.5 EDTA ) pH 5.4 ile ekstrakte edildi. 4°C'de 4 saat çalkalayıcı ( Games ve arkadaşları, 2008 ). Daha sonra süpernatan süzüldü (Whatman No 1, gözenek boyutu 11 um) ve %85 amonyum sülfat ((NH4)2S04 ile 24 saat 4°C'de doyuruldu . Gece boyunca oluşan çökelti, damıtılmış suya karşı kapsamlı bir şekilde diyaliz edildi . kalıntıyı (NH 4 ) çıkarmak için 12 saat içinde 4°C'de benzoillenmiş membran performansı (MWCO 2,000 Da) (Sigma Aldrich-ABD) kullanarak su2 SO 4 . Düşük moleküler ağırlıklı peptitleri izole etmek için, protein ekstraktı Amicon Ultra 15-ml 10,000 MWCO santrifüj filtrelerden (Millipore, ABD) süzüldü, ardından liyofilizasyon yapıldı. Ters fazlı HPLC kolonu (C18 kolonu, 7,8 × 300 mm; Tosoh, Tokyo, Japonya), %5–%65 (v/v) gradyanı ile B solüsyonu (asetonitrilde %0,098 TFA) ve A (%0,1 TFA) su içinde) 85 dakika boyunca 1 ml/dk akış hızında, liyofilize ekstraktlardan antifungal peptitleri saflaştırmak için kullanıldı ( Asoodeh ve diğerleri, 2012).). 220 nm'deki absorbansa göre pikler toplandı ve daha sonra antifungal etkinin belirlenmesi için liyofilize edildi ve en yüksek aktiviteye sahip olanlar toplandı. Mantar önleyici aktivite saflığına sahip tepe noktasının kontrol edilmesi için, bu tepe noktası aynı koşullar altında benzer çözücü sistemi kullanılarak aynı sütunda yeniden kromatografiye tabi tutuldu.

        Trisin–SDS-PAGE
        Antifungal aktiviteye sahip zirvenin saflığının yanı sıra moleküler ağırlığı değerlendirmek için, Schagger'a dayalı bir Bio-Rad elektroforez aparatında indirgeme koşulları altında trisin-sodyum dodesil sülfat-poliakrilamid jel elektroforezini (Tricine-SDS-PAGE) gerçekleştirdik. yaklaşımı ( Schägger ve Von Jagow, 1987 ). Numuneler 0,5 ml numune tamponu (0,05 M Tris-HCl, %4 SDS, %12 gliserol, %0,01 bromofenol mavisi ve %2 2-ME) ile karıştırıldı ve 10 dakika kaynatıldı. Daha sonra numuneler, gece boyunca 25 V gerilimde trisin-SDS çalıştırma tamponu ile %16,5 Tris-tricin jeli üzerinde çalıştırıldı. Jeli boyamak için gümüş boyama kullanıldı. Yaklaşık moleküler kütleyi belirlemek için standart olarak bir protein merdiveni (2–250 kDa) kullanıldı.

        Radyal Difüzyon Deneyi
        Toplanan piklerin antifungal aktivitesi, Wang yaklaşımına göre bir radyal difüzyon tahlili (RDA) kullanılarak değerlendirildi ( Wang ve diğerleri, 2015 ). Aspergillus _türünün spor süspansiyonu, yeterli miktarda %0.1'lik sulu Tween 80 çözeltisi ilave edildikten sonra kültür yüzeyinin steril bir cam çubukla hafifçe kazınmasıyla elde edildi. Süspansiyon, misel parçalarını çıkarmak için steril tülbentten geçirildi. Kısaca mantar hücreleri, 42°C'de sabitlenmiş Sabouraud dekstroz agarına ilave edildi, ardından bir Petri kabına hızlı bir şekilde dağıtıldı. Oyuklar açıldı ve 200 ug/ml'lik stoktan 2 ug/oyuk nihai konsantrasyondaki peptitin 10 ul'si oyuklara yüklendi. Amfoterisin B (0.2 ug/oyuk) pozitif kontrol olarak kabul edildi. 35°C'de 48 saat inkübasyonun ardından kuyucukların etrafındaki şeffaf bölgeler değerlendirildi. Tüm deneyler, üç kopya halinde iki kez yapıldı. Minimum İnhibitör Konsantrasyonlar ve Minimum Fungisidal Konsantrasyonlar


        Saflaştırılmış ve aktif peptidin minimum inhibisyon konsantrasyonu deneyi (MIC), Li ve arkadaşları tarafından tarif edildiği gibi ölçüldü. ( Li ve diğerleri, 2015 ) bazı değişikliklerden sonra. Kısaca, test 10 5'lik bir inokulum ile belirlendi.Sabouraud dekstroz suyu içinde konidia/ml ve 96 oyuklu mikroplakalarda değerlendirildi. Nihai seviyelerin (1 ila 250 ug/ml) elde edilmesi için seri iki kat dilüsyonlar sağlandı. Kontrol olarak amfoterisin B (0.016 ila 4 ug/ml) kullanıldı. Plakaların inkübasyonu yapıldı (35°C/48 saat). Minimum inhibe edici konsantrasyon (MIC), görsel tahlil ile 96 oyuklu mikroplakalarda mantar büyümesinin %99 inhibisyonu olarak tanımlandı. Daha sonra her kuyucuktan yirmi mikrolitre numune izole edildi ve Sabouraud dekstroz agar plakalarına kaplandı. Plakalar, 35°C'de 48 saat süreyle inkübe edildi. Minimum fungisidal konsantrasyon (MFC), mantar hücrelerini öldürmek için en düşük peptit seviyesi olarak tanımlandı.

        Kütle Spektrometresi ve N-Terminal Sekans Analizi
        İzole antifungal peptidin moleküler kütlesi, yüklenecek kütlede (m/z) elektrosprey iyonizasyon kütle spektrometresi (MS) ile belirlendi. Saflaştırılmış antifungal peptidin amino asit dizisi, Edman bozunması kullanılarak belirlendi. Buna göre, bir ABI Procise Edman Mikro Sıralayıcı (Model 492), çevrimiçi olarak 140C ABI PTH Amino Asit Analiz Cihazına bağlandı.

        Sekans Hizalaması ve Filogenetik Ağaç
        Benzer diziler için arama, veri tabanı araştırması (yeni peptit ile en yüksek benzerliğe sahip benzer peptitleri bulmak için) ve CLC ana çalışma tezgahı yazılımı ile gerçekleştirildi. Bu bölümde veritabanı araştırması sonucunda yeni peptid ile en yüksek benzerliğe sahip 10 peptid elde edilmiştir. Bu peptitlerin sekanslarının yeni peptit ile karşılaştırılması için program patlaması yapıldı. Hizalama manuel olarak ayarlandı ve CLC Main Workbench yazılımı tarafından bir filogenetik ağaç elde edildi. Ağaç topolojisinin tekrar üretilebilirliğinin değerlendirilmesi için filogenetik ağaç, 100 replikasyonlu bootstrap analizi kullanılarak ölçüldü.

        Biyoinformatik Analiz
        Genel AMP tahmini için APD3 tahmin sunucusu ( https://wangapd3.com/main.php ) kullanıldı. Peptidin AMP olasılığı, makine öğrenme algoritmaları destek vektör makinesi (SVM), yapay sinir ağı, rastgele orman ve CAMP R3 sunucusu ( ////www.camp3.bicnirrh.res) kullanılarak diskriminant analizi yoluyla tahmin edildi. ). Her bir algoritma eşiği 0,5 ila 1 idi. Eşik sayısı >0,5 olan peptidler AMP idi. Antifungal peptidin fizikokimyasal özellikleri, ExPASy Proteomics sunucusu ( //www.expasy.org/tools/protparam.html ) kullanılarak tahmin edildi.) net yük, hidrofobik oran, Boman indeksi, izoelektrik nokta (pI), kararsızlık indeksi, alifatik indeks ve moleküler ağırlık değerleri için. Beklenen peptidin antifungal aktivitesini tahmin etmek için çevrimiçi sunucu iAMPpred ( //cabgrid.res.in:8080/amppred/server.php ) kullanıldı. HeliQuest sunucusu ( https://heliquest.ipmc.cnrs.fr/cgi-bin/ComputPara ms.py ) kullanılarak peptitlerdeki amino asit konumunu tahmin etmek için sarmal tekerlek projeksiyonu yapıldı . Peptidin üç boyutlu yapısı, I-TASSER sunucusu ( //zhanglab.ccmb.med.umich.edu/ITASSER/ ) tarafından çevrimiçi olarak tahmin edildi. Model kalitesi Accelrys, DS Visualizer ver.

        1.7. Peptit Sentezi
        Peptit, 9-florenilmetoksikarbonil (F-moc) katı faz kimyası ( Merrifield, 1986 ) kullanılarak Biomatik Co. (Ontario, Kanada) tarafından kimyasal olarak sentezlendi. Peptit saflığı ve kütle kimliği, sırasıyla ters fazlı yüksek performanslı sıvı kromatografisi (RP-HPLC) ve elektrosprey iyonizasyon-kütle spektrometrisi (ESI-MS, Waters ZQ 2000, Milford, MA, ABD) ile doğrulandı.

        Hemolitik Aktivite
        Peptit hemolitik aktivitesi, Wu ve arkadaşları tarafından tanımlandığı gibi hesaplandı . (2014) . Taze heparinize edilmiş insan tam kanı santrifüjlendi (5 dakika/4°C). Elde edilen eritrositler, üç kez yıkandı, ardından PBS içinde yeniden süspanse edildi. Daha sonra peptit seri dilüsyonu (1-128 ug/ml) eritrositlerle karıştırıldı ve inkübasyona tabi tutuldu (1 saat/37°C). PBS ile tedaviden sonra eritrositler negatif kontrol olarak ve %0.1 Triton X-100 pozitif kontrol olarak uygulandı. Hemoglobin salımı, ELISA okuyucu kullanılarak 567 nm'de absorpsiyonun ölçülmesi yoluyla ölçüldü. Hemoliz (%) = [test OD - negatif kontrol OD)/(pozitif kontrol OD - negatif kontrol OD)] × 100. Sitotoksisite Testleri


        Antifungal peptidin insan embriyonik böbrek hücre hattı 293 (HEK293) üzerindeki sitotoksik etkileri, 3-(4,5-dimetiltiyazol-2-il)-2,5-difeniltetrazolyum bromür (MTT) analizleri ( Mosmann, 1983 ) ile hesaplandı. Kısaca, Dulbecco'nun %10 (h/h) fetal sığır serumu (FBS) ile işlenmiş modifiye Eagle ortamı (DMEM), hücre hatlarının büyümesi için kullanıldı ve 37°C'de %5 C02 ile inkübasyona tabi tutuldu . Hücrelerin tohumlanması, oyuk başına yaklaşık 5.000 hücre içeren 96 gözlü plakalarla yapıldı. %5 C02 içinde 37°C'de gece boyunca kültürün ardından24 saat boyunca hücrelerin tedavisi için farklı peptit seviyeleri (1–128 µg/ml) kullanıldı. Ardından, 4 saat boyunca 50 ml MTT (0.5 mg/ml) kullanılarak inkübasyon yapıldı. İnkübasyonun ardından plakalar santrifüjlendi (5 dakika) ve süpernatanlar çıkarıldı ve formazan kristallerini çözmek için DMSO (dimetil sülfoksit; 150 mi) eklendi. Sonunda, 570 nm'de absorbansı ölçmek için ELISA okuyucusu kullanıldı. Bulgular, her biri üç kopya halinde gerçekleştirilen üç ayrı deneyden elde edildi.

        Sıcaklık ve pH Stabilite Testi
        Farklı sıcaklıklarda ve pH değerlerinde peptit stabilitesi , Batdorj ve diğerleri tarafından tanımlandığı gibi hesaplandı . (2006) . Isı duyarlılığı, çeşitli sıcaklıklarda (10°C–100°C) 1 saat inkübasyondan sonra değerlendirildi. Çeşitli sıcaklıklarda ısıtılmayan peptit, bir kontrol olarak kabul edildi. pH stabilite testi için numuneler 1 mol/l HCl veya 1 mol/l NaOH ile 2-10'a ayarlandı ve 1 saat 25°C'ye yerleştirildi. Ardından, antifungal analizlerden önce pH değeri 7.0'da sabitlendi. Solüsyon içinde çözünen peptit (pH: 7.2) bir kontrol olarak kabul edildi. Testler üç kez yapıldı. A. fumigatus, radyal difüzyon tahlili kullanılarak değerlendirilen antifungal aktiviteyi saptamak için bir gösterge olarak uygulandı.

        PI Alımı Kullanılarak Mantar Hücresi Bütünlüğünün Belirlenmesi
        A. fumigatus hyphae üzerindeki mantar önleyici peptidin zar geçirgenliğini belirlemek için , floresan mikroskopi tahliline göre propidyum iyodür (PI) alım tahlili kullanıldı. Kısaca, SDB içinde A. fumigatus'un (106 conidia /ml) bir conidia süspansiyonu, altı oyuklu bir mikroplakaya döküldü ve inkübe edildi (35°C, 24 saat). Daha sonra hifler, sürekli çalkalama (120 rpm) yoluyla 35°C'de 4 saat boyunca 8 ve 16 ug/ml konsantrasyonlarında antifungal peptit ile inkübe edildi . Daha sonra, karanlıkta oda sıcaklığında 15 dakika boyunca her bir oyuğa 50 μg/ml nihai konsantrasyona sahip PI solüsyonu ilave edildi. Daha sonra, boyanmış hif örnekleri, uygun filtrelerle (530/590 nm'de uyarma/emisyon) floresan mikroskopi (Eclipse 80i, Nikon, Japonya) ile görüntülendi. Negatif kontroller olarak işlenmemiş mantar hifası kullanıldı.

        Geçirgen Elektron Mikroskobu
        TEM, bazı modifikasyonlarla daha önce açıklandığı gibi ( Bozzola ve Russell, 1999 ) yapıldı . Hif morfolojisi üzerindeki peptit etkisini değerlendirmek için, A. fumigatus'un ( 106 conidia/ml) conidia süspansiyonunu SDB'de (1 mi) 24 gözlü (24 saat/35°C) mikroplakalarda kültürledik, ardından antifungal peptite maruz bıraktık 16 ve 32 µg/ml konsantrasyonlarda ve 35°C'de 4 saat inkübasyon ( Ries ve diğerleri, 2017). Daha sonra numuneler %2,5 (v/v) glutaraldehit (3 saat/4°C) kullanılarak sabitlendi. %0,1 PBS'de üç kez yıkamanın ardından, numuneler daha sonra 70 dakika içinde PBS içinde %1 osmiyum tetroksit kullanılarak sabitlendi ve hafifçe artan aseton çözeltilerinde dehidre edilmiş PBS ile iki kez yıkamaya tabi tutuldu ve Epon 812'ye gömüldü. mikrotom ile ultra ince kesitler alınmış, uranil asetat ve kurşun sitrat ile boyama yapılmış ve Zeiss EM 900 TEM cihazı ile 80 kV'da gözlemlenmiştir. Muamele edilmemiş hif, kontrol olarak kabul edildi.

        İstatistiksel analiz
        Değerler ortalama ± SD olarak ifade edildi. İstatistiksel analiz, GraphPad Prism 5 Statistical yazılımı (GraphPad Software, Inc., La Jolla, CA, ABD) ile yapıldı.

        Git: Sonuçlar

        Peptid Saflaştırma ve Trisin–SDS-PAGE
        Carum carvi tohumlarından elde edilen düşük moleküler ağırlıklı peptitler (10 kDa'dan az) liyofilize edildi ve ters faz kromatografisine tabi tutuldu ve bir C18 kolonu kullanılarak fraksiyonlamadan sonra 11 fraksiyon elde edildi (Şekil 1A). 220 nm'de piklerin absorbanslarındaki artış ve düşüşe göre, her bir pik manuel olarak toplandı ve Aspergillus türlerine karşı antifungal aktivite açısından test edilmek üzere C18 RP-HPLC'den ayrı bir pik olarak 11 pik elde edildi . 11 zirveden en güçlü antifungal aktiviteyi gösteren Pik 7 ileri çalışmalar için seçildi. Daha fazla saflaştırma için, antifungal aktiviteye sahip bu aktif pik, aynı elüsyon koşulları altında yeniden kromatografi için aynı kolona tekrar uygulandı (Şekil 1B). Elute edilen fraksiyon 220 nm'de izlenerek tek bir pik gözlendi (Şekil 1B). Bu zirve ayrıca SDS-PAGE analizi, kütle spektrometresi ve N terminal dizilimi ile analiz edildi.Şekil 1CTricine-SDS-PAGE üzerinde RP-HPLC kolonundan saflaştırılan antifungal aktiviteye sahip 10-kDa'lık bir kesme ve aktif zirveye sahip bir ultra-membrandan geçirilen ekstrakte edilmiş peptitlerin elektroforez modelini gösterir. SDS-PAGE analizinin yanı sıra saflaştırma işlemlerinin ardından, moleküler ağırlığı yaklaşık 3.7 kDa olan tek bir bant elde edildi.


        Resim, çizim vb. tutan harici bir dosya. Nesne adı: fcimb-11-743346-g001.jpg
        Şekil 1
        (A) Carum carvi tohumlarından peptid RP-HPLC saflaştırması . Ok, aktif zirve 7'yi gösterir. (B) Aktif zirve 7'yi saflaştırmak için yeniden kromatografi işleminden sonra elde edilen kromatogram. (C) Gümüşle boyanmış Tricine–SDS-PAGE profili (1) moleküler ağırlık belirteçleri (2–250 kDa) ), (2) 10 kDa kesme ile bir ultra-membrandan geçen ekstre edilmiş peptit ve (3) RP-HPLC kolonu saflaştırılmış tepe noktası 7. (D) ESI-saflaştırılmış antifungal peptidin kütle spektrumu . Çoklu yüklü moleküler iyonlar belirtilir.

        Kütle Spektrometresi ve Amino Asit Dizisi
        Antifungal aktivitesi nedeniyle, daha fazla karakterizasyon için zirve 7'nin peptit bandı (~3.7 kDa bandı) seçildi. Saflaştırılmış peptitin ESI kütle analizleri, bu peptitin moleküler kütlesinin 3.759.43 Da olduğunu gösterdi (Şekil 1D). Sonuç, Tricine-SDS-PAGE tarafından belirtilen bağıl moleküler ağırlık ile yakın bir uyum içindeydi. Amino asit dizisini belirlemek için peptit, Edman bozunması yoluyla dizilendi . Bu analizden, RVCFRPVAPYLGVGVSGAVRDQIGVKLGSVYKGPRG olarak 36 amino asit kalıntısının bir fragmanı elde edildi.

        Antifungal Etkinlik
        RDA kullanılarak HPLC ile saflaştırılan 11 zirvenin biyolojik aktivitesinin analizi, Aspergillus türlerine karşı sadece üç antifungal aktivite zirvesi gösterdi. İki pik, yani 3 ve 5 için inhibisyon zon çapları, test edilen mantarlara karşı çok zayıf bir ihmal edilebilirlik gösteren 5 mm civarında rapor edilmiştir. Pik 7, tüm Aspergillus türlerine karşı güçlü antifungal aktivite gösterdi ve C. carvi tohumlarının ana biyoaktif peptidi olarak kabul edildi . Aspergillus türlerine karşı ortak bir antifungal bileşik olarak zirve 7 ve AmpB'nin inhibisyon bölgeleri,
        Şekil 2A. Aspergillus türlerinin inhibisyon zonlarının çapları zirve 7 için 16–20 mm iken, AmpB için 22–25 mm idi (Şekil 2B). Peptit antifungal aktivitesi ayrıca mikro sıvı seyreltme yöntemiyle MIC değerleri olarak değerlendirildi. Da gösterildiği gibitablo 1peptit , 8–16 µg/ml arasında değişen MIC değerleri ile Aspergillus türlerine karşı aktifti . Amfoterisin B, 0.25-0.5 µg/ml'lik MİK aralığı gösterdi ve peptidin Aspergillus türlerine karşı MFC'leri, MİK'lerine eşit veya iki kat daha yüksek.

        Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı fcimb-11-743346-g002.jpg'dir.

        şekil 2
        (A, B) Pik 7'nin Aspergillus türlerine karşı antifungal etkisi, radyal difüzyon yöntemi kullanılarak ölçüldü. (A) (A) A. flavus PFCC 50041, (B) A. niger ATCC 9142 ve (C) A. fumigatus'a karşı zirve 7 (2 μg/kuyu) ve amfoterisin B'nin (0,2 μg/kuyu) inhibisyon bölgesi PFCC 50091. (B) Ortalama ± SD olarak verilen değerlerle test edilen mantarlar için tepe 7 ve AmpB inhibisyon zon çaplarının nicel sonuçları. tablo 1


        Aspergillus türleri için Cc-AFP1 ve amfoterisin B'nin (AmpB) MİK ve MFC değerleri (μg/mL) .
        Aspergillus fumigatus PFCC 50091 8 0,5 16 0,5
        Aspergillus flavus PFCC 50041 16 0,5 32 1
        Aspergillus niger ATCC 9142 8 0,25 8 0,5
        Ayrı bir pencerede aç Sekans Hizalaması ve Filogenetik Ağaç


        Elde edilen peptit sekansı, bildirilen AMP'lere tam sekans homolojisi göstermedi ve BLAST sonuçları ayrıca bu peptitin Carum carvi tohumlarından yeni bir antifungal peptit olduğunu doğruladı . Sekans hizalaması ve filogenetik ağaç, yeni peptidin Nigella sativa L. tohumlarından saflaştırılan Ns-D2 ile en yüksek sekans benzerliğine (%36) sahip olduğunu gösterdi (Şekil 3A, B ) ( Rogozhin ve diğerleri, 2011 ). Bu benzerlik ve peptit saflaştırma kaynağı ( Carum carvi ) temel alınarak, bu yeni peptit Cc-AFP1 olarak adlandırıldı.
        Resim, çizim vb. tutan harici bir dosya. Nesne adı: fcimb-11-743346-g003.jpg
        Figür 3
        Cc-AFP1'in karakteristik özellikleri ve yapısal verileri. (A) Cc-AFP1 amino asit dizilerinin yanı sıra diğer antimikrobiyal peptitlerle ilgili dizilerin hizalanması. (B) Cc-AFP1'in filogenetik ağacı. Filogenetik ağaç, CLC ana çalışma tezgahı yazılımı tarafından elde edildi. Her sıra adı ilgili dalın sonuna yazılır. Ağaç güvenilirliği, 100 replikasyonlu bootstrap yöntemi kullanılarak belirlendi. (C) Cc-AFP1 peptidinin ve polar ve polar olmayan amino asitlerin sarmal tekerlek diyagramı ve bunların peptit içindeki yerleri gözlemlenebilir. (D) Rastgele bobinli Cc-AFP1'in üç boyutlu yapı modeli.

        Biyoinformatik ve Yapısal Analiz
        Genel olarak, CAMP R3'ün çevrimiçi sunucularının tahminleri (Tablo 2) ve iAMPpred, Cc-AFP1'in AMP olduğunu ve antifungal aktiviteye sahip olduğunu gösterdi.Tablo 2Cc-AFP1'in dizilerini ve temel fizikokimyasal özelliklerini sunar. Net yükü, hidrofobik kalıntısı, protein bağlama potansiyeli (Boman indeksi) ve pI sırasıyla +5, %38, 0.96 ve 10.44'e eşitti. Bu peptit için istikrarsızlık indeksi ve alifatik indeks değerleri sırasıyla 8.99 ve 94.44 idi. Cc-AFP1 peptidinin sarmal tekerlek diyagramı, bu peptidin ikincil bir amfipatik konformasyona sahip olduğunu ve hidrofobik bir yüze sahip olduğunu gösterdi (Şekil 3C). I-TASSER sunucusunu kullanan üçüncül yapı tahmini, Cc-AFP1 peptidinde rastgele bir bobin yapısı gösterdi (Şekil 3D). C-puanı, I-TASSER kullanılarak öngörülen modellerin kalitesini tahmin etmek için kullanılabilir (-5,0 ila 2,0 aralığında). Cc-AFP1'in dikkate alınan C-puanı -2,07 idi ve bu, modelin doğru küresel topolojiyi gösterdiğini gösteriyordu. Tablo 2


        Cc-AFP1'in antimikrobiyal aktivite olasılığı ve fizikokimyasal özellikleri.
        RVCFRPVATYLGVCGVSGACDRRCVKLGSCVYKGPG 38 5 0,96 3759.43 8.99 94.44 0,96 0.98 AMP
        Ayrı bir pencerede aç Hemolitik Aktivite ve Sitotoksisite


        Cc-AFP1 hemolitik aktivitesi, insan eritrositlerinde ölçüldü. Da gösterildiği gibiŞekil 4A, MIC (8–16 μg/ml) ve MFC (16-32 μg/ml) aralıklarında Cc-AFP1 toksisitesi %5'in altındaydı. Cc-AFP1, test edilen en yüksek konsantrasyonda (128 μg/ml) %12,56 hemolitik aktivite indüklemiştir. Cc-AFP1'in HEK293 hücrelerine karşı toksisitesi, 2 ile 128 μg/ml arasında değişen seri peptit seviyeleri ile değerlendirildi (Şekil 4B). Cc-AFP1, 8–32 μg/ml'de HEK293 hücrelerine karşı düşük (>6) toksisiteye sahipti.
        Resim, illüstrasyon vb. içeren harici bir dosya. Nesne adı fcimb-11-743346-g004.jpg'dir.
        Şekil 4
        Cc-AFP1'in hemolitik etkisi, sitotoksik etkisi ve stabilitesi. (A) İnsan eritrositlerine karşı Cc-AFP1 hemolitik etkisi. (B) Cc-AFP1'in HEK293 hücrelerine karşı sitotoksik etkisi. (C, D) Cc-AFP1'in A. fumigatus hücrelerine karşı antifungal etkisi üzerindeki sıcaklık (C) ve pH (D) etkileri . Değerler ortalama ± SD olarak verilmiştir. Sıcaklık ve pH'ın Antifungal Aktivite Üzerindeki Etkileri


        Sıcaklığın Cc-AFP1 üzerindeki etkisini ölçtük (Şekil 4C) ve bulgulara göre, Cc-AFP1 çeşitli sıcaklıklarda (20°C ila 80°C) 1 saat boyunca kararlıydı. İlginç bir şekilde, 1 saatlik tedavi sırasında 100°C'de A. fumigatus için %21.6'lık düşük bir azalma gözlendi.

        Şekil 4Dantifungal peptit stabilitesi üzerindeki pH etkilerini gösterir. Cc-AFP1, 8 ila 10 arasındaki pH değerlerinde stabil kaldı. Ancak, pH 2, 4 ve 6.0'da aktivitesi azaldı. Peptidin Hücre Zarı Geçirgenliği Üzerindeki Etkileri


        Cc-AFP1'in A. fumigatus hifa zarının bütünlüğü üzerindeki etkisi, floresan mikroskobu ile PI alım prosedürü kullanılarak araştırıldı. PI (DNA boyayan bir flüoresan probu), hücre zarı hasar gördüğünde hücreye girebilir ve nükleik asitlerle bağlanarak kırmızı bir flüoresan üretir. Da gösterildiği gibiŞekil 5, Cc-AFP1 konsantrasyonu 8'den 16 ug/ml'ye çıkarıldığında A. fumigatus'un hiflerinde floresan yoğunluğu arttı ; ancak, kontrolde flüoresans yoktu. PI alımının sonucu, Cc-AFP1'in hücre zarının bütünlüğünü bozabileceğini gösterdi.

        Resim, çizim vb. tutan harici bir dosya. Nesne adı fcimb-11-743346-g005.jpg'dir.
        Şekil 5
        Membran geçirgenleştirme tahlili sırasında propidyum iyodür alımının floresan mikroskop analizi. (A) Tedavi edilmemiş A. fumigatus hyphae'nin floresan görüntüleri . (B, C) Sırasıyla 8 ve 16 μg/ml konsantrasyonda Cc-AFP1 ile işlenmiş A. fumigatus hiflerinin floresan görüntüleri . Morfolojik Gözlem


        Buna göreŞekil 6A. fumigatus'un işlenmemiş hifleri sağlam hücre duvarlarına, entegre hücre zarlarına ve normal organellere sahipti (Şekil 6A, B ) . Buna karşılık, 16 µg/ml konsantrasyonunda Cc-AFP1 ile muamele edilmiş hiflerde, zayıflatılmış düzensiz hücre duvarı, yapısal bütünlük kaybı ve hücre zarının büzülmesi, hücre zarının hücre duvarından ayrılması gibi patolojik ince yapı değişiklikleri, sitoplazmik tükenme ve sitoplazmik organellerin, özellikle mitokondrinin membranöz hasarı belirgindi (Şekil 6C, D ) . Peptidin 32 µg/ml konsantrasyonuna maruz bırakılan mantarda, hücre zarlarının ve sitoplazmik organellerin yoğun yıkımı ile birlikte hif içeriğinin tamamen tükenmesi gözlendi (Şekil 6E, F ) .
        Resim, illüstrasyon vb. tutan harici bir dosya. Nesne adı fcimb-11-743346-g006.jpg'dir.
        Şekil 6
        A. fumigatus'un transmisyon elektron mikroskobu - işlenmemiş hifler (A, B) ve 16 ug/ml (C, D) ve 32 ug/ml (E, F) konsantrasyonlarında Cc-AFP1'e maruz kalan hifler . A. fumigatus'un işlenmemiş hifleri bozulmamış hücre duvarlarına, entegre hücre zarlarına ve normal organellere (A, B) sahipti . Buna karşılık, Cc-AFP1 ile işlenmiş hiflerde, zayıflatılmış düzensiz hücre duvarı, yapısal bütünlüğün kaybı ve hücre zarının büzülmesi, hücre zarının hücre duvarından ayrılması, sitoplazmik tükenme ve sitoplazmik zarın zaröz hasarı dahil olmak üzere patolojik ince yapı değişiklikleri organeller özellikle mitokondri belirgindi (C–F) .

        Git: Tartışma


        Bitkilerdeki AMP'lerin çeşitliliği büyüktür ve şimdiye kadar yüzlerce farklı peptit karakterize edilmiştir. Mevcut çalışma, Carum carvi tohumlarının protein ekstraktında yeni bir antifungal peptit olan Cc-AFP1'in in vitro izolasyonu, saflaştırılması, karakterizasyonu ve mekanizmalarına odaklanmıştır . BLAST sonuçlarına göre, Cc-AFP1, AMP veritabanlarından bildirilen herhangi bir AMP'ye tam bir sekans homolojisi göstermedi; bu, onun Carum carvi tohumlarından yeni bir bitki antifungal peptidi olduğunu güçlü bir şekilde gösterir . Araştırmamızda, Cc-AFP1'in in silico prediktif ve fizikokimyasal özellikleri, in vitro ile devam etmeden önce birkaç çevrimiçi araç tarafından araştırıldı.deneyler. Cc-AFP1, mantar zarı bileşenlerinin negatif yükleriyle elektrostatik etkileşim için önemli olan +5 net yüke sahip toplam 36 amino asitten oluşur ( Kim ve diğerleri, 2014 ).

        Cc-AFP1 ayrıca toplam hidrofobik oranı %38 olan ve mantar hücre zarı bütünlüğünün bozulmasına dahil olabilecek yedi hidrofobik kalıntı içerir. Çalışmalar, hidrofobikliğin AMP aktivitesinin önemli parametrelerinden biri olduğunu göstermiştir ( Chen ve diğerleri, 2007 ; Kim ve diğerleri, 2014 ). Mantar hücresi sitoplazmik zarında gözenekler oluşturmak için lipit çift tabakası ile etkileşime girmek için hidrofobik kalıntılara ihtiyaç vardır. Son olarak, bu tür etkileşimler, AMP'nin polar olmayan yüzünün hidrofobik etkileşimlerle zara sokulabildiği mantar sitoplazmik zarını bozar ( Chen ve diğerleri, 2007 ). Cc-AFP1'in Boman indeksi 0,96 kcal/mol'dür ve pozitif Boman indeksi, Cc-AFP1'in mantar hücre zarı proteinlerine bağlanma kapasitesini artırabilir (O ve diğerleri, 2018 ). Bu indeks, proteinin başka bir proteine ​​bağlanma yeteneğini tahmin edebilir ( Boman, 2003 ). Kararsızlık endeksi 8.99'dur; bu değer, 40'tan az olması gereken bir test tüpündeki peptidin stabilitesini gösterir. Ayrıca alifatik indeks 94.44'tür ve termostabilite ile bağlantılıdır ve yan zincirlerin (Ala, Val, Ile ve Leu) nispi hacmi olarak kabul edilir. ( Guruprasad ve arkadaşları, 1990 ).

        Sarmal tekerlek projeksiyonu ile yapı tahmini, valin ve lösin gibi bazı hidrofobik kalıntıların yapının bir tarafında biriktiğini ortaya çıkardı ve bu, antifungal peptidin polar olmayan yüzünün hidrofobik etkileşimler yoluyla zara yerleştirilmesini kolaylaştırabilir. . Öte yandan, yapı üzerindeki pozitif polar amino asitler, AMP'nin hücre zarına bağlanmasından sonra fosfolipid bağlanmasını destekleyebilir ( He ve ark., 2018 ).

        Sekans hizalaması ve filogenetik ağaç sonuçlarına göre Cc-AFP1, bitki kaynağından Ns-D2 antifungal peptit ile en yüksek sekans benzerliğini (%36) gösterdi. Ns-D2, Nigella sativa L. tohumlarından izole edildi ve A. niger , Fusarium türleri ve Botrytis cinerea gibi mantarlara karşı etkili bir antifungal aktivite gösterdi . Ns-D2'nin net yükü ve hidrofobik kalıntı yüzdesi, sırasıyla +3 ve %36 idi ( Rogozhin ve arkadaşları, 2011 ).

        Cc-AFP1'in tahmin sonuçları ve fizyokimyasal özellikleri, onu gelecek vaat eden bir AFP adayı yapmaktadır. Çalışmalarımızda in silico sonuçları deneysel olarak da doğruladık.

        Bu yazıda, Cc-AFP1'in MIC'leri ve MFC'leri Aspergillus türlerine karşı ölçüldü ve Cc-AFP1 , diğer antimikrobiyal peptidlerle karşılaştırılabilir MIC'lerle Aspergillus türlerine karşı dikkate değer bir inhibe edici etki gösterdi .

        Antifungal peptitler , mantar zarlarının geçirgenliğini ve bozulmasını arttırma, reaktif oksijen türleri oluşturma ve apoptoz veya hücre içi reseptör bağlanması gibi farklı mekanizmalar aracılığıyla etki eder ( Van der Weerden ve diğerleri, 2013 ). Bu çalışmada Cc-AFP1, PI alım tahlili ile doğrulanan zar geçirgenliğini arttırdı. Yalnızca hücre zarları hasar görmüş ölü mantar hücreleri PI boyasını alabilir ve Cc-AFP1 ile muamele edilmiş A. fumigatus, kontrolden daha fazla PI boyası alabilmiştir. Birçok çalışma, PI alım tahlili ile AMP'lerle tedaviden sonra hücre zarı hasarını doğrulamıştır ( Dathe ve diğerleri, 2002 ; Li ve diğerleri, 2016 ; Lyu ve diğerleri, 2016)). TEM sonuçları ayrıca Cc-AFP1 tarafından membran hasarının indüklendiğini ve hücre yüzeyi bütünlüğünün kaybolduğunu gösterdi. Bu sonuçlar, AMP ile tedaviden sonra mantar hücre zarında mevcut olan hasarı belirlemek için TEM'i kullanan diğer birçok çalışmayla karşılaştırılabilir ( Lyu ve diğerleri, 2016 ; Do Nascimento Dias ve diğerleri, 2020 ).

        Genel olarak, bu gözlemler ve kanıtlar, membran hasarının ve geçirgenliğin, daha önce birçok antimikrobiyal peptid için rapor edilmiş olan bu yeni peptidin etki mekanizmalarından biri olduğunu göstermektedir ( Maurya ve diğerleri, 2011 ). Bununla birlikte, Cc-AFP1'in etki şeklini tanımak zordur ve bu peptidin kesin hedeflerini daha iyi anlamak için daha fazla çalışma yapılmalıdır.

        AMP'lerin terapötik etkileri, AMP'lerin memeli hücrelerine belirgin bir sitotoksik etki göstermeden patojenleri yok etmelerini sağlayan hücre seçiciliği ile ilişkilidir. Hücre seçiciliği, AMP'lerin patojenleri konakçı hücrelerden ayırt etme kapasitesini değerlendirebilir. Da gösterildiği gibiŞekil 4A, Cc-AFP1, MIC ve MFC aralıkları üzerindeki etkili konsantrasyonlarda incelenen RBC'lere karşı ihmal edilebilir düzeyde (>%5) hemolitik aktivite gösterdi. Daha yüksek konsantrasyonlarda, Cc-AFP1 için bazı anlamsız derecelerde sitotoksik etkiler ve hemolitik aktivite rapor edilmiştir. İnsan RBC'sine karşı hemolitik aktivite, peptit hidrofobikliği ile ilişkilidir ve önceki çalışmalar, yüksek hidrofobiklik ile karakterize edilen peptitlerin, kırmızı kan hücresi zarı hidrofobik çekirdeğe derinlemesine nüfuz etme ve hemolitik aktiviteler gerçekleştirme eğiliminde olduğunu göstermiştir (Jiang ve diğerleri, 2008 ) .

        AMP'lerin hücre seçiciliğinin yanı sıra, stabiliteleri, onları terapötik amaçlarla kullanmak için önemli bir zorluktur. Peptid çözeltilerine yardımcı çözücüler eklenmesi, denatürasyon veya azaltılmış aktivite gibi farklı etkilere sahiptir. Şaşırtıcı bir şekilde, Cc-AFP1 antifungal aktivitesi, geniş bir sıcaklık ve pH aralığında açık bir şekilde değişmedi. Cc-AFP1'in termal kararlılığı, APD veritabanları tarafından hesaplanan alifatik indekslerle gösterilen peptidin doğası ve kimyasal yapısından kaynaklanabilir.

        Git: Çözüm
        Bu çalışmada, a-heliks ve rastgele bobin yapısına sahip yeni bir antifungal peptit olarak Cc-AFP1, Carum carvi tohumlarından izole edildi ve ters fazlı HPLC ve Edman bozunma yöntemleri ile karakterize edildi. Peptit, insan patojenik Aspergillus türlerine karşı kayda değer bir antifungal aktivite gösterirken, in vitro olarak bariz bir hemolitik aktiviteye ve sitotoksisiteye sahip değildi . Cc-AFP1'in mantar hücre duvarına ve hücre zarına zarar verdiği, hücre geçirgenliğini arttırdığı ve mantar hücrelerinin zar yapılarını bozduğu gösterildi. Birlikte ele alındığında bu sonuçlar, Cc-AFP1'in Aspergillus'un neden olduğu mantar enfeksiyonlarıyla mücadele eden yeni bir mantar önleyici madde olarak geliştirmek için çekici bir molekül olabileceğini göstermektedir.türler. Antifungal aktivite spektrumunu, Cc-AFP1'in tam etki mekanizmasını ve yapı-aktivite ilişkisini araştırmak için daha fazla çalışma yapılması önerilir.

        Git: Veri Kullanılabilirliği Bildirimi


        Çalışmada sunulan orijinal katkılar makale/ek materyalde yer almaktadır. Daha fazla soru ilgili yazara yönlendirilebilir.

        Git: Etik Bildirimi


        Bu çalışma Ulusal Tıbbi Araştırma Geliştirme Enstitüsü (NIMAD) Etik Kurulu tarafından IR.NIMAD.REC.1396.121 etik numarası altında onaylanmıştır.

        Git: Yazar Katkıları


        SS ve MR-A çalışmayı tasarladı ve tasarladı. Deneysel çalışmaları SS, SK, HZ-Z, MG, MS-G, FJ ve MR-A gerçekleştirdi. Makaleyi SS, MG ve MR-A yazdı. Tüm yazarlar makaleye katkıda bulundu ve gönderilen sürümü onayladı. MR-A çalışmayı denetledi.

        Git: Finansman


        Bu çalışma, Ulusal Tıbbi Araştırma Geliştirme Enstitüsü'nden (NIMAD), Tahran, İran'dan 958634 ve 963646 ödül numaraları altında Elit Araştırmacı Hibe Komitesi tarafından desteklenmiştir. MR-A'ya.

        Git: Çıkar çatışması


        Yazarlar, araştırmanın olası bir çıkar çatışması olarak yorumlanabilecek herhangi bir ticari veya finansal ilişki olmaksızın yürütüldüğünü beyan eder.

        Git: Yayıncının Notu


        Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve bunların bağlı kuruluşlarının veya yayıncının, editörlerin ve hakemlerin iddialarını mutlaka temsil etmez. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisi tarafından ileri sürülebilecek herhangi bir iddia, yayıncı tarafından garanti edilmemekte veya onaylanmamaktadır.

        Git: Referanslar
        • Armstrong-James D., Meintjes G., Brown GD (2014). İhmal Edilen Bir Salgın: HIV/AIDS'te Mantar Enfeksiyonları . Trendler Mikrobiyoloji. 22 , 120–127. doi: 10.1016/j.tim.2014.01.001 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Asoodeh A., Zardini HZ, Chamani J. (2012). Bataklık Kurbağasının ( Rana Ridibunda ) Deri Salgılarından İki Yeni Antimikrobiyal Peptitin, Temporin-Ra ve Temporin-Rb'nin Tanımlanması ve Karakterizasyonu . J.Pept. bilim 18 , 10–16. doi: 10.1002/psc.1409 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Banerjee S., Denning DW, Chakrabarti A. (2021). Mantar Hastalıkları için Tek Sağlık Yönleri ve Öncelikli Yol Haritası: Mini Bir İnceleme . Hintli. J.Med. Res 153 , 311–319. doi: 10.4103/ijmr.ijmr_768_21 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Batdorj B., Dalgalarrondo M., Choiset Y., Pedroche J., Métro F., Prevost H., et al.. (2006). Moğol Airag'ından İzole Edilen Laktik Asit Bakterilerinden Üretilen İki Bakteriyosinin Saflaştırılması ve Karakterizasyonu . J. Uygulama Mikrobiyoloji. 101 , 837–848. doi: 10.1111/j.1365-2672.2006.02966.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Boman H. (2003). Antibakteriyel Peptitler: Temel Gerçekler ve Gelişmekte Olan Kavramlar . J. Stajyer. Med. 254 , 197–215. doi: 10.1046/j.1365-2796.2003.01228.x [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Bongomin F., Gago S., Oladele RO, Denning DW (2017). Mantar Hastalıklarının Küresel ve Çok Uluslu Prevalansı—Tahmin Kesinliği . J. Mantarlar 3 ( 4 ), s.57. doi: 10.3390/jof3040057 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Bozzola JJ, Russell LD (1999). Elektron Mikroskobu: Biyologlar İçin İlkeler ve Teknikler . (Boston: Jones ve Bartlett 670; ). [ Google Akademik ]
        • Campos ML, De Souza CM, De Oliveira KBS, Dias SC, Franco OL (2018). Bitki Bağışıklığında Antimikrobiyal Peptidlerin Rolü . J. Uzm. Bot. 69 , 4997–5011. doi: 10.1093/jxb/ery294 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Chen Y., Guarnieri MT, Vasil AI, Vasil ML, Mant CT, Hodges RS (2007). α-Helikal Antimikrobiyal Peptidlerin Etki Mekanizmasında Peptid Hidrofobikliğinin Rolü . Antimikrob. Ajanlar. kimyager. 51 , 1398–1406. doi: 10.1128/AAC.00925-06 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Chowdhary A., Sharma C., Meis JF (2017). Azole Dirençli Aspergilloz: Epidemiyoloji, Moleküler Mekanizmalar ve Tedavi . J. Bulaş. Dis. 216 , S436–S444. doi: 10.1093/infdis/jix210 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Cruz J., Ortiz C., Guzman F., Fernandez-Lafuente R., Torres R. (2014). Antimikrobiyal Peptitler: Patojenik Mikroorganizmalara Karşı Umut Veren Bileşikler . Curr. Med. kimya 21 , 2299–2321. doi: 10.2174/0929867321666140217110155 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Dathe M., Meyer J., Beyermann M., Maul B., Hoischen C., Bienert M. (2002). Amfipatik Sarmal Model Peptitlerin Yapısal Parametrelerinin Değişimiyle İncelenen Lipid Çift Tabakalarına ve Hücre Zarlarına Yönelik Peptid Seçiciliğinin Genel Yönleri . Biyokimya. biyografiler. Açta 1558 , 171–186. doi: 10.1016/s0005-2736(01)00429-1 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • De Cesare GB, Cristy SA, Garsin DA, Lorenz MC (2020). Antimikrobiyal Peptitler: Antifungal Tedavide Yeni Bir Sınır . Mbio 11 , 1–21. doi: 10.1128/mBio.02123-20 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • De Lucca AJ (2000). Antifungal Peptitler: Mantar Enfeksiyonlarının Tedavisi İçin Potansiyel Adaylar . Uzman. görüş. Araştırmak İlaçlar 9 , 273–299. doi: 10.1517/13543784.9.2.273 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Denning DW, Bromley MJ (2015). Antifungal Boru Hattı Nasıl Desteklenir ? bilim 347 , 1414–1416. doi: 10.1126/science.aaa6097 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Do Nascimento Dias J., De Souza Silva C., De Araújo AR, Souza JMT, Júnior PHDHV, Cabral WF, et al.. (2020). Antimikrobiyal Peptidlerin ToAP2 ve NDBP-5.7'nin Candida albicans Planktonik ve Biyofilm Hücrelerine Karşı Etki Mekanizmaları . bilim 10 , 1–14 . doi: 10.1038/s41598-020-67041-2 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Faruck MO, Yusof F., Chowdhury S. (2016). Böceklerden Elde Edilen Antifungal Peptidlere Genel Bir Bakış . Peptitler 80 , 80–88. doi: 10.1016/j.peptides.2015.06.001 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Fernández de Ullivarri M., Arbulu S., Garcia-Gutierrez E., Cotter PD (2020). Terapötik Ajanlar Olarak Antifungal Peptitler . Ön. Hücre. bulaştırmak. Mikrobiyoloji. 10 , 105. doi: 10.3389/fcimb.2020.00105 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Firacative C. (2020). İnsanlarda İnvazif Mantar Hastalığı: Gerçek Etkisinin Farkında Mıyız ? Oswaldo Cruz Enstitüsü Anıları 115 , 1–9. doi: 10.1590/0074-02760200430 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Games PD, Dos Santos IS, Mello É.O., Diz MS, Carvalho AO, De Souza-Filho GA, et al.. (2008). Phaseolus vulgaris L. Seeds'den Yeni Bir Antifungal Defensini Kodlayan Bir cDNA'nın İzolasyonu, Karakterizasyonu ve Klonlanması . Peptitler 29 , 2090–2100. doi: 10.1016/j.peptides.2008.08.008 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Guruprasad K., Reddy BB, Pandit MW (1990). Bir Proteinin Kararlılığı ve Dipeptit Kompozisyonu Arasındaki Korelasyon: Bir Proteinin Birincil Dizisinden In vivo Kararlılığını Tahmin Etmek İçin Yeni Bir Yaklaşım . Protein. Müh. Des. Sel. 4 , 155–161. doi: 10.1093/protein/4.2.155 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • He J., Luo X., Jin D., Wang Y., Zhang T. (2018). . _ Lactobacillus casei HZ1. moleküller. 23 , 2246. doi: 10.3390/molecules23092246 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Jiang Z., Kullberg BJ, van der Lee H., Vasil AI, Hale JD, Mant CT ve diğerleri.. (2008). Hidrofobikliğin α-Helikal Antimikrobiyal Peptidlerin Antifungal Aktivitesi Üzerindeki Etkileri . kimya Biol. İlaç Des. 72 , 483–495. doi: 10.1111/j.1747-0285.2008.00728.x [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Kim H., Jang JH, Kim SC, Cho JH (2014). Artırılmış Kararlılık ve Hücre Spesifikliğine Sahip Kısa Antimikrobiyal Peptidlerin De Novo Üretimi . J. Antimikrob. kimyager. 69 , 121–132. doi: 10.1093/jac/dkt322 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Lécorché P., Walrant A., Burlina F., Dutot L., Sagan S., Mallet J.-M., et al.. (2012). Galaktoz ve/veya Triptofan İçeren Hücreye Nüfuz Eden Peptidlerin Hücresel Alımı ve Biyofiziksel Özellikleri . Biyokimya. biyografiler. Açta 1818 , 448–457. doi: 10.1016/j.bbamem.2011.12.003 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Li J., Koh J.-J., Liu S., Lakshminarayanan R., Verma CS, Beuerman RW (2017). Membran Aktif Antimikrobiyal Peptitler: Mekanistik Görüşleri Tasarıma Çevirmek . Ön. Nörobilim. 11 , 73. doi: 10.3389/fnins.2017.00073 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Li RF, Lu YL, Lu YB, Zhang HR, Huang L., Yin Y., et al.. (2015). İnsan Kromogranin A'dan Türetilen Yeni Bir Antifungal Peptitin Antiproliferatif Etkisi ve Karakterizasyonu . Tecrübe. orada. Med. 10 , 2289–2294. doi: 10.3892/etm.2015.2838 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Li L., Sun J., Xia S., Tian X., Cheserek MJ, Le G. (2016). Bir Hücreye Nüfuz Eden Peptid Türevi Antimikrobiyal Peptid APP'nin Candida albicans'a Karşı Antifungal Aktivitesinin Mekanizması : Hücre İçi DNA Bağlanması ve Hücre Döngüsü Tutulması . Uygulama Mikrobiyoloji. Biyoteknoloji 100 , 3245–3253. doi: 10.1007/s00253-015-7265-y [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Lyu Y., Yang Y., Lyu X., Dong N., Shan A. (2016). Kısa PMAP-36'dan Türetilen Peptidlerin Bakterilere ve Candida'ya Karşı Antimikrobiyal Aktivitesi, Gelişmiş Hücre Seçiciliği ve Etki Modu . bilim 6 , 1–12. doi: 10.1038/srep27258 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Maurya IK, Pathak S., Sharma M., Sanwal H., Chaudhary P., Tupe S., et al.. (2011). Candida albicans'a Karşı Reaktif Oksijen Türlerinin (ROS) Birikerek ve Hücre Duvarının Bozulmasıyla Yeni Sentetik Peptidlerin Antifungal Aktivitesi . Peptitler 32 , 1732–1740. doi: 10.1016/j.peptides.2011.06.003 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Meneguetti BT, Machado LDS, Oshiro KG, Nogueira ML, Carvalho CM, Franco OL (2017). Meyvelerden Alınan Antimikrobiyal Peptitler ve Biyoteknolojik Araçlar Olarak Potansiyel Kullanımları — Bir İnceleme ve Genel Bakış . Ön. Mikrobiyoloji. 7 , 2136. doi: 10.3389/fmicb.2016.02136 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Merrifield B. (1986). Katı Faz Sentezi . bilim 232 , 341–347. doi: 10.1126/science.3961484 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Mosman T. (1983). Hücresel Büyüme ve Hayatta Kalma için Hızlı Kolorimetrik Test: Proliferasyon ve Sitotoksisite Testlerine Uygulama . J. Immunol. Yöntemler 65 , 55–63. doi: 10.1016/0022-1759(83)90303-4 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Nasiri S., Shams-Ghahfarokhi M., Razzaghi-Abyaneh M. (2020). Carum carvi Esansiyel Yağının Candida albicans'ta ERG6 Gen İfadesi ve Virülans Faktörleri Üzerine Etkisi . Curr. Med. Mikol. 6 , 30–36. doi: 10.18502/CMM.6.2.3628 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Panda H. (2010). Baharatlar ve Çeşniler El Kitabı (Yetiştirme, İşleme ve Ekstraksiyon) . Hindistan: Asia Pacific Business Press Inc. [ Google Scholar ]
        • Pathakumari B., Liang G., Liu W. (2020). İnvaziv Mantar Enfeksiyonlarına Karşı Bağışıklık Savunması: Kapsamlı Bir İnceleme . Biyomed. Eczacı. 130 , 110550. doi: 10.1016/j.biopha.2020.110550 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Razzaghi-Abyaneh M., Shams-Ghahfarokhi M., Rezaee MB, Jaimand K., Alinezhad S., Saberi R., et al.. (2009). Carum carvi L., Thymus vulgaris ve Citrus aurantifolia Esansiyel Yağlarının Kimyasal Bileşimi ve Antiaflatoksijenik Aktivitesi . Gıda Kontrolü 20 , 1018–1024. doi: 10.1016/j.foodcont.2008.12.007 [ CrossRef ] [ Google Akademik ]
        • Ries LNA, Rocha MC, de Castro PA, Silva-Rocha R., Silva RN, Freitas FZ, et al.. (2017). Aspergillus fumigatus CrzA Transkripsiyon Faktörü, Kaspofunginin Paradoksal Etkisi Sırasında Kitin Sentaz Geni Ekspresyonunu Aktive Eder . mBio 8 , e00705–e00717. doi: 10.1128/mBio.00705-17 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Rogozhin EA, Oshchepkova YI, Odintsova TI, Khadeeva NV, Veshkurova ON, Egorov TA, et al.. (2011). Nigella sativa L. Tohumlarından Yeni Antifungal Defensinler . Bitki Fizyol. biyokimya 49 ( 2 ), s.131–s.137. doi: 10.1016/j.plaphy.2010.10.008 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Schägger H., Von Jagow G. (1987). 1 ila 100 kDa Aralığında Proteinlerin Ayrılması İçin Trisin-Sodyum Dodesil Sülfat-Poliakrilamid Jel Elektroforezi . Anal. biyokimya 166 , 368–379. doi: 10.1016/0003-2697(87)90587-2 [ PubMed ] [ CrossRef ] [ Google Akademik ]
        • Silva PM, Gonçalves S., Santos NC (2014). Defensinler: Ökaryotlardan Antifungal Dersler . Ön. Mikrobiyoloji. 5 , 97. doi: 10.3389/fmicb.2014.00097 [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Tam JP, Wang S., Wong KH, Tan WL (2015). Bitkilerden Antimikrobiyal Peptitler . Farmasötikler 8 , 711–757. doi: 10.3390/ph8040711 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Van der Weerden NL, Bleackley MR, Anderson MA (2013). Doğal Olarak Oluşan Antifungal Peptidlerin Özellikleri ve Etki Mekanizmaları . Hücre. Mol. Hayat. bilim 70 , 3545–3570. doi: 10.1007/s00018-013-1260-1 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Wang K., Dang W., Xie J., Zhu R., Sun M., Jia F., ve diğerleri. (2015). Antimikrobiyal Peptit Protonektin, Membran Bütünlüğünü Bozar ve Maya Hücrelerinde ROS Üretimini İndükler . Biyokimya. biyografiler. Açta 1848 , 2365–2373. doi: 10.1016/j.bbamem.2015.07.008 [ PubMed ] [ CrossRef ] [ Google Scholar ]
        • Wu X., Wang Z., Li X., Fan Y., He G., Wan Y., ve diğerleri.. (2014). Amino Asit Bazlı Aktivite Tahmin Yöntemi Kullanılarak Geliştirilen Antimikrobiyal Peptidlerin İn Vitro ve İn Vivo Aktiviteleri . Antimikrob. Ajanlar. kimyager. 58 , 5342–5349. doi: 10.1128/AAC.02823-14 [ PMC ücretsiz makale ] [ PubMed ] [ CrossRef ] [ Google Scholar ]

        Yorum yap


        • #5
          Baharatların Antibakteriyel ve Antifungal Aktiviteleri

          Qing Liu , 1 Xiao Meng , 1 Ya Li , 1 Cai-Ning Zhao , 1 Guo-Yi Tang , 1 ve Hua-Bin Li 1, 2, *
          Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
          1 Guangdong Eyaleti Temel Gıda, Beslenme ve Sağlık Laboratuvarı, Beslenme Bölümü, Halk Sağlığı Okulu, Sun Yat-sen Üniversitesi, Guangzhou 510080, Çin; nc.ude.usys.2liam@842quil (QL); nc.ude.usys.2liam@7xgnem (XM); nc.ude.usys.2liam@82ayil (YL); nc.ude.usys.2liam@ncoahz (C.-NZ); nc.ude.usys.2liam@5yggnat (G.-YT)
          2 Güney Çin Denizi Biyolojik Kaynak Kullanım ve Kullanım İşbirlikçi Yenilik Merkezi, Sun Yat-sen Üniversitesi, Guangzhou 510006, Çin
          * Yazışma: nc.ude.usys.liam@nibauhil ; Tel.: +86-20-8733-2391
          Git: Soyut


          Patojenlerin neden olduğu bulaşıcı hastalıklar ve bozucu mikroorganizmaların neden olduğu gıda zehirlenmeleri tüm dünyada insan sağlığını tehdit etmektedir. Günümüzde gıda endüstrisinde gıda ürünlerinin raf ömrünü uzatmak ve güvenliğini artırmak ve tıpta hastalığa neden olan mikroorganizmaları inhibe etmek için kullanılan bazı antimikrobiyal ajanların etkinlikleri mikrobiyal direnç ile zayıflatılmıştır. Bu nedenle bu direnci yenebilecek yeni antimikrobiyal ajanların keşfedilmesi gerekmektedir. Karanfil, kekik, kekik, tarçın ve kimyon gibi pek çok baharat, Bacillus subtilis ve Pseudomonas fluorescens gibi gıdaları bozan bakterilere, Staphylococcus aureus gibi patojenlere karşı önemli antibakteriyel ve antifungal aktivitelere sahiptir .Vibrio parahaemolyticus , Aspergillus flavus gibi zararlı mantarlar , hatta metisiline dirençli Staphylococcus aureus gibi antibiyotiğe dirençli mikroorganizmalar . Bu nedenle baharatlar, yeni ve güvenli antimikrobiyal ajanlar olarak geliştirilebilecek büyük bir potansiyele sahiptir. Bu derleme, çeşitli baharatların ve türevlerinin antibakteriyel ve antifungal aktiviteleri üzerine yapılan bilimsel çalışmaları özetlemektedir.

          Anahtar Kelimeler: baharat, antibakteriyel aktivite, antifungal etki, antimikrobiyal özellik, uçucu yağ, karanfil, kekik, kekik
          Git: 1. Giriş


          Gıdadaki mikrobiyal patojenler bozulmaya neden olabilir ve gıda kaynaklı hastalık insidansına ve Staphylococcus aureus ( S. aureus ), Escherichia coli ( E. coli ) ve Pseudomonas aeruginosa ( P. aeruginosa gibi) gibi çoklu ilaca dirençli ve dezenfektan dirençli bakterilerin ortaya çıkmasına katkıda bulunabilir )— hızla artarak morbidite ve mortalite artışına neden olmuştur [ 1 ]. Benzoik ve sorbik asitler gibi zayıf asitler [ 2 ], gıda endüstrisinde patojenik ve bozulmaya neden olan gıdayla ilgili mikroorganizmaları kontrol ederek, üretilmiş gıdaların tüm raf ömrü boyunca güvenliğini ve stabilitesini artırmak için kimyasal koruyucular olarak yaygın şekilde uygulanır [2].3 ], mikrobiyolojik direncin gelişmesine neden olabilir [ 4 ]. Ayrıca, kimyasal koruyucular , gıda ürünlerindeki Listeria monocytogenes ( L. monocytogenes ) gibi birçok patojenik bakteriyi tamamen ortadan kaldıramaz veya bozulmaya neden olan mikroorganizmaların büyümesini geciktiremez [ 5 ]. Sentetik kimyasal koruyucuların ikamesi olarak doğal ürünler, insan vücudunda doğal olarak daha iyi tolere edildikleri ve gıda endüstrisi için doğal üstünlüklere sahip oldukları için giderek daha fazla kabul görmektedir [4 ] . Gıda endüstrisinde doğal ürünlerin antimikrobiyal aktivitelerinin araştırılması ve uygulanması gerekmektedir.

          Morbidite ve mortalite, tüm dünyada esas olarak bulaşıcı hastalıklardan kaynaklanmaktadır. Dünya Sağlık Örgütü, 2011 yılında dünya çapında 55 milyon insanın öldüğünü ve ölümlerin üçte birinin bulaşıcı hastalıklardan kaynaklandığını bildirdi [ 6 ]. Antibiyotiğe dirençli mikroorganizmalar, bulaşıcı hastalıkların tedavilerinden biri olan antibiyotik ilaçlara maruz kaldıktan sonra direnç kazanma ve bulaştırma yetenekleri sayesinde hayatta kalabildikleri ve iyileşebildikleri için ölüm oranlarını artırabilir [7 ] . Antibiyotiğe dirençli bakteriler, antibiyotik etkinliğini tehdit eder ve yaygın enfeksiyonlar için bile terapötik seçenekleri sınırlar [ 8]. S. aureus gibi antibiyotiğe dirençli hastalığa neden olan mikroorganizmaları inhibe edebilen yeni antibakteriyel ajanların araştırma ve geliştirmesindeki düşüş, ortaya çıkan antibiyotik direncini şiddetlendirmektedir [ 9 ]. Bu nedenle, insan hastalıklarının tedavisinde etkili bir ilaç olarak kullanılabilecek, patojenlere karşı etkinliği yüksek ve yan etkileri önemsiz olan doğal ürünlere çok dikkat edilmelidir.

          Baharatlar, eski zamanlardan beri yiyecek ve tatlandırıcı olarak [ 10 ] ve son yıllarda ilaç ve gıda koruyucuları olarak kullanılmıştır [ 11 , 12 ]. Karanfil, kekik, kekik, tarçın ve kimyon gibi birçok baharat bulaşıcı hastalıkları tedavi etmek veya gıdaları korumak için uygulanmıştır çünkü bunların patojenik ve bozucu mantar ve bakterilere karşı antimikrobiyal aktiviteleri deneysel olarak kanıtlanmıştır [10 , 13 , 14 ] . Ayrıca, bu baharatların ikincil metabolitleri antimikrobiyal ajanlar olarak bilinir ve bunların çoğu genel olarak gıda için önemsiz yan etkileri olan güvenli malzemeler olarak kabul edilir [ 11] .]. Bu nedenle baharatlar, gıda kaynaklı ve insan patojenlerine karşı yeni antimikrobiyal ajanları keşfetmeye ve geliştirmeye aday olabilir.

          Bu derleme, baharat ve türevlerinin antibakteriyel ve antifungal aktiviteleri üzerine yapılan bilimsel çalışmaları özetlemekte ve gelecekteki çalışmalar için bazı öneriler ve beklentiler sunmaktadır.

          Git: 2. Karanfil


          Myrtaceae familyasına ait karanfil ( Eugenia caryohyllata ), oral bakterilere karşı antimikrobiyal aktiviteleri nedeniyle periodontal hastalık gibi bulaşıcı hastalıklara karşı antiseptik olarak tıpta yaygın olarak kullanılmaktadır [15 ] . Karanfil, bazı gıda kaynaklı patojenlere karşı etkili antimikrobiyal aktiviteleri nedeniyle raf ömrünü uzatmak için doğal bir katkı maddesi veya antiseptik olarak gıda endüstrisinde de yaygın olarak kullanılmaktadır [16 ] . Karanfil yağı ve ekstraktının ana aktif bileşeni, yani öjenol bulundu [ 15 , 17 ].

          2.1. Karanfilin Antimikrobiyal Aktiviteleri
          Karanfil suyu ekstraktının antimikrobiyal aktiviteleri , patojenik mikroorganizmalara ( bir piyelonefrit modelinde S. aureus ve E. coli ) karşı in vitro ve in vivo olarak incelenmiştir [ 18 ]. Agar kuyusu difüzyon yöntemiyle bir in vitro çalışma yürütüldü ve sonuçlar, karanfil suyu ekstraktının S'ye karşı antibakteriyel aktivite gösterdiğini gösterdi . aureus (minimum inhibitör konsantrasyon ( MIC ): 2 mg/mL) ve E. coli(MIK: 2,5 mg/mL). İn vivo iken, çalışma 40 yetişkin erkek albino farede gerçekleştirildi ve sonuçlar, karanfil özünün doğal antimikrobiyaller olarak etkinliğini doğruladı. Bilyeli öğütülmüş tarçın ve karanfilin ultra ince tozlarının doğrudan antimikrobiyal aktiviteleri Kuang ve arkadaşları tarafından test edildi. [ 19 ] E'ye karşı . koli , S. _ aureus , Brochothrix thermosphacta ( B. thermosphacta ), Lactobacillus rhamnosus ( L. rhamnosus ) ve Pseudomonas fluorescens ( P. fluorescens) etten, et suyu seyreltme yöntemi kullanılarak. Karanfil tozu, %1,0 a / h ( L. rhamnosus ve B. thermosphacta ) ile %2,0 a / v ( P. fluorescens ) arasında değişen MIC'lerle test edilen beş mikroorganizma üzerinde güçlü inhibe edici etkiler gösterdi ve inhibe edici etkiler , ağırlıkça %0,5'ten %2,5'e yükselen toz konsantrasyonları .

          Karanfil, mikroorganizmaların hücre duvarlarını ve zarlarını tahrip edebilir ve sitoplazmik zarlara nüfuz edebilir veya hücrelere girebilir, ardından DNA ve proteinlerin normal sentezini engelleyebilir [ 16 ]. Karanfilin ana bileşeni olan öjenol, Bacillus cereus'ta ( B. cereus ) amilaz ve proteaz üretimini inhibe edebilir ve hücre duvarı bozulması ve hücre lizisi yeteneğine sahiptir [ 20 ].

          2.2. Karanfil ve Diğer Baharatların Antimikrobiyal Aktivitelerinin Karşılaştırılması
          Badei ve ark. [ 21 ] disk difüzyon yöntemini kullanarak fenol ile karşılaştırıldığında dokuz Gram-pozitif bakteri suşuna, dört Gram-negatif bakteri suşuna, yedi küfe ve iki mayaya karşı kakule, tarçın ve karanfil esansiyel yağlarının (EO'lar) antimikrobiyal aktivitelerini test etti. Karanfil EO en yüksek antimikrobiyal aktiviteyi gösterdi ve %10 karanfil EO'nun antimikrobiyal spektrumu (inhibisyon bölgelerinin çapı), %10 fenolden 1,48 kat daha fazlaydı. Schmidt ve ark. [ 22 ] 4 baharatın öjenol içeren EO'larının 38 Candida albicans ( C. albicans) üzerindeki antifungal etkilerini değerlendirdi.) mikrodilüsyon yöntemi kullanılarak 12 adedi orofarinks, 16 adedi vajinadan ve 10 adedi hasarlı deriden izole edilmiştir. Clove EO, tüm C'ye karşı en güçlü antifungal aktiviteye sahipti . albicans suşları test edilen baharatlar arasındadır. Tek başına saf öjenol, karanfil yaprağı EO'dan daha zayıf antifungal aktiviteler sergiledi. Angienda ve ark. [ 23 ] dört baharatın EO'larının Salmonella typhimurium ( S. typhimurium ), E. coli , B. cereus ve Listeria innocua ( L. innocua) agar difüzyon testi ile. Karanfil EO, %1,25 v / v ( B. cereus ) ila %2,50 v / v ( S. typhimurium ve E. coli ) . Lomarat ve ark. [ 17 ] , Morganella morganii ( M. morganii ) dahil histamin üreten bakterilere karşı dokuz baharattan elde edilen EO'ların antimikrobiyal aktivitelerini bildirmiştir.), sıvı seyreltme tahlilini kullanarak MIC'leri ve minimum bakterisidal konsantrasyonları (MBC'ler) belirleyerek ve ayrıca biyootografi kılavuzluğunda izolasyonla EO'ların antibakteriyel bileşiklerini buldu. Sonuçlar, karanfil EO'nun M'ye karşı en etkili olduğunu gösterdi . morganii , MIC %0,13 v / v ve MBC %0,25 v / v ile test edilen dokuz baharat arasında . Öjenol, ince tabaka kromatografisi biyootografi tahlili ile karanfil EO'nun aktif bileşeni olarak tanımlandı.

          Shan ve ark. [ 24 ] , beş baharat ve bitkiden elde edilen etanol ekstraktlarının L'ye karşı antibakteriyel aktivitelerini test etti . monositojenler , S. _ aureus ve Salmonella enterica ( S. enterica ) bakteri sayımını sayarak çiğ domuz etinde. Karanfil özü ile işlendiğinde, test edilen bakterinin en az kolonisine sahip çiğ domuz örnekleri bulundu. Bayoub ve ark. [ 25 ] , karanfil de dahil olmak üzere 13 bitkinin etanol ekstraktlarının L. monocytogenes'e karşı antimikrobiyal aktivitelerini bildirdiler , MIC'ler agar kuyu difüzyon testi ile belirlendi. Sonuçlar, karanfil ekstraktının L'ye karşı en etkili inhibitör olduğunu gösterdi.. monocytogenes , MIC 0.24 mg/mL ile seçilen diğer 12 bitki etanol ekstraktı ile karşılaştırıldı. Cui ve ark. [ 26 ] 90 bitki özünün (su ve %99.5 etanol özleri) Clostridium spp.'ye karşı antimikrobiyal aktivitelerini test etti . Tüm su ekstraktları arasında triptikaz pepton glukoz maya ekstraktı suyu (pH = 7.0) içinde Clostridium botulinum'a karşı en yüksek antimikrobiyal aktiviteye karanfil suyu ekstraktının sahip olduğu bulundu ve karanfil ekstraktının MIC'leri Clostridium spp.'ye karşı %0.1 ila %0.2 arasında değişti. 12 bitkinin 3 ekstraktının (etil asetat, aseton ve metanol ekstraktları) antimikrobiyal etkileri 2 mantar ( Kluyveromyces marxianus ( K. marxianus) üzerinde test edilmiştir.) ve Rhodotorula rubra ( R. rubra )) ve 8 bakteri ( Klebsiella pneumoniae ( K . pneumoniae ), Bacillus megaterium ( B. megaterium ), P. aeruginosa , S. aureus , E. coli , Enterobacter cloacae ( E. cloacae ) , Disk difüzyon yöntemi ile Corynebacterium xerosis ( C. xerosis ) ve Streptococcus faecalis ( S. faecalis ) [ 27]. Karanfil en etkili inhibitör etkileri sergiledi. Karanfilden elde edilen metanol ekstraktı, K hariç test edilen mikroorganizmalara (inhibisyon bölgelerinin çapı (DIZ'ler): 8–24 mm) karşı inhibisyon göstermiştir . pnömoni _ Aseton ekstraktı, R dışında test edilen mikroorganizmalara (DIZ'ler: 8–18 mm) karşı inhibisyon gösterdi . Rubra ve K. _ pnömoni _ Etil asetat ekstresi sadece B'ye karşı antibakteriyel aktivite göstermiştir . megaterium (DIZ: 7 mm). Liang ve ark. [ 28], yedi baharatın antimikrobiyal aktivitelerini gözlemledi ve her baharatta farklı konsantrasyonlarda ekstraktlar ve EO'lar, elma şarabındaki bozulmaya neden olan mikroorganizmaların büyümesi üzerindeki etkileri toplam plaka sayılarıyla test etmek için kullanıldı. Karanfil ürünleri, test edilen diğer baharatlarla karşılaştırıldığında en güçlü antimikrobiyal aktiviteleri gösterdi. Oda sıcaklığında karanfil yağı için elma şarabında %0,8 v / v ve karanfil tozu için %2 w / w oranında mikroorganizmalarda yaklaşık yedi log azalma gözlenmiştir . Badhe ve ark. [ 29 ] birçok baharat ve bitki tozunun S. aureus'a karşı antimikrobiyal aktivitelerini test etti . aureus , S. typhimurium , E. colive B. _ 0, 3, 6, 12, 24 ve 48 saatlik aralıklarla soğutulmuş sıcaklıkta (8 ± 2 °C) cereus . Sonuçlar, %2 konsantrasyonunda karanfil tozunun S üzerinde en yüksek etkiyi gösterdiğini göstermiştir . aureus ve ardından E . koli ve S. _ typhimurium ve buzdolabında 24 saatte karanfil tozu bakteri sayımında önemli bir azalmaya yol açtı.

          2.3. Karanfilin Gıda Ambalajlarında Antimikrobiyal Ajan Olarak Uygulanması
          Karanfil EO ve fonksiyonel özleri, bazı çalışmalarda antimikrobiyal aktiviteleri değerlendirilen filmlere dahil edilmiştir. Bir çalışmada, yüksek, orta ve düşük moleküler kütledeki kitosan, EO'lar ve iki baharattan elde edilen özler ile birleştirilmiş antimikrobiyal filmler ile detaylandırılmıştır [ 30 ]. Ardından filmlerin E. coli üzerindeki antimikrobiyal etkileri araştırıldı . koli , S. _ Typhimurium , S. _ Aureus , B. _ Cereus ve L. _ monositojenler. %2 EO içeren düşük moleküler kütleli kitosan ve karanfilden elde edilen etil heptanoat ekstraktı ile hazırlanan filmler, test edilen suşların çoğuna karşı antimikrobiyal aktivite göstermiştir. Başka bir çalışmada, araştırmacılar EO'ların antimikrobiyal aktivitelerini ve kimyon, karanfil ve elecampane'nin fonksiyonel özlerini E'ye karşı test ettiler . coli , S. typhimurium , B . Cereus , S. _ Aureus ve L. _ MIC'leri ve MBC'leri belirleyerek [ 31]. Ayrıca DIZ'leri belirleyerek, EO'lar tarafından hazırlanan yenilebilir filmlerin ve kitosan polimerik yapıya dayalı fonksiyonel baharat ekstraktlarının aynı bakterilere karşı antibakteriyel aktivitelerini değerlendirmişlerdir. Karanfil EO, test edilen tüm bakteriler üzerinde 500 mg/L MİK ile en iyi inhibitör etkileri gösterdi, karanfil özleri, karanfilin L'ye karşı etil kaproat özü dışında, EO'nunkine çok benzer MİK'ler gösterdi . B. monocytogenes (750 mg/ L MİK) ve karanfil etil heptanoat ekstresi B. cereus (250 mg/L MİK). EO'larla eklenen kitosan filmleri arasında sadece karanfil, L hariç test edilen tüm bakterilerin inhibisyon bölgelerini göstermiştir . monositojenler. Karanfil filminin etil heptanoat özü ayrıca test edilen tüm bakterilere karşı karanfil EO'nunkinden daha zayıf antibakteriyel aktivitelere sahipti. Liu ve ark. [ 32 ] , DIZ'leri belirlemek için disk difüzyon yöntemini ve MIC'leri belirlemek için seri seyreltme tahlilini kullanarak PE film antimikrobiyal pakette saklanan soğutulmuş domuz etindeki mikrobiyal popülasyonlara karşı baharat EO'larının antimikrobiyal aktivitelerini değerlendirdi. Karanfil EO, test edilen tüm baharat EO'ları arasında test edilen mikroorganizmalara karşı en etkili olanıydı. Karanfil EO'sunun MIC'leri, Enterobacteriaceae , S'ye karşı %0.10, %0.10 ve %0.30 v / v idi . aureus ve Pseudomonassırasıyla sp. Baharat EO'ları, bozulma popülasyonlarının sayısını azaltma yeteneğine sahipti, ancak bozulma mikrobiyotasının tür çeşitliliğini azaltamadı.

          Toplu olarak, karanfil EO ve özleri, bazı gıda bozulmalarına ve gıda kaynaklı patojenlere (tablo 1), özellikle Gram-pozitif bakteriler. Karanfilin MIC'leri, P gibi test edilen mikroorganizmalara karşı %2,5'ten daha azdı . fluorescens , S. typhimurium , E. coli , B. cereus ve L. innocua. Genel olarak konuşursak, alıntı yapılan makalelerin nitelikleri iyidir ve sonuçlar güvenilirdir.

          tablo 1

          Karanfilin antibakteriyel ve antifungal aktiviteleri.
          Karanfil ve tarçın suyu özleri Staphylococcus aureus ve Escherichia coli Hem in vivo hem de in vitro sonuçlar, karanfil ekstraktının doğal antimikrobiyaller olarak etkinliğini doğrulamıştır. [ 18 ]
          Bilyalı öğütülmüş karanfilin ultra ince tozları E. _ koli , S. _ aureus , Brochothrix thermosphacta , Lactobacillus rhamnosus , Pseudomonas fluorescens Karanfil tozu, %1.0 ila %2.0 w / v arasında değişen minimum inhibitör konsantrasyonları (MIC'ler) ile güçlü bir inhibitör etki göstermiştir . [ 19 ]
          Kakule, tarçın, karanfil esansiyel yağları (EO'lar) ve fenol 13 bakteri suşu, 7 küf ve 2 maya Clove EO en yüksek antimikrobiyal aktiviteye sahipti. [ 21 ]
          4 baharat EO'su Candida albicans Clove EO, tüm C'ye karşı en güçlü aktivitelere sahipti . albicans suşları. [ 22 ]
          4 baharat EO'su Salmonella typhimurium , E. coli , Bacillus cereus , Listeria innocua Clove EO, %1,25 ile %2,50 v / v arasında değişen MIC'lerle en etkili inhibisyonu gösterdi . [ 23 ]
          9 baharat EO'su Morganella morganii Clove EO, %0,13 v / v MIC ile en etkili olanıydı . [ 17 ]
          5 baharat ve bitkiden elde edilen etanol özleri Listeria monocytogenes , S. aureus , Salmonella enterica Karanfil özü, test edilen bakterilere karşı en etkili olandı. [ 24 ]
          13 bitki etanol özü L. _ monositojenler Karanfil ekstresi, 0.24 mg/mL'lik MIC ile en etkili olanıydı. [ 25 ]
          90 bitki özü Clostridium spp. Karanfil suyu ekstresi, %0,1 ila %0,2 arasında değişen MIC ile tüm su ekstraktları arasında en etkili olanıydı. [ 26 ]
          12 bitki türünün etil asetat, aseton ve metanol ekstraktları Kluyveromyces marxianus , Rhodotorula rubra , Klebsiella pneumoniae , Bacillus megaterium , Pseudomonas aeruginosa , S. aureus , E. _ coli , Enterobacter cloacae , Corynebacterium xerosis , Streptococcus faecalis Karanfil en etkili inhibitör etkilere sahipti. [ 27 ]
          7 baharat, özleri ve EO'ları Elma şarabındaki mikroorganizmalar Karanfil ürünleri, test edilen diğer baharatlarla karşılaştırıldığında en güçlü antimikrobiyal aktiviteye sahipti. [ 28 ]
          Birçok baharat ve bitki tozu S. _ aureus , S. typhimurium , E. koli , B. _ cereus %2 oranında karanfil tozu S'ye karşı daha etkili olmuştur . aureus ve ardından E . koli ve S. _ Typhimurium soğutma altında. [ 29 ]
          EO'lar ve kimyon ve karanfilin fonksiyonel özleri. E. _ koli , S. _ Typhimurium , S. _ Aureus , B. _ Cereus , L. _ monositojenler Karanfil ve karanfil etil heptanoat ekstraktının %2 EO konsantrasyonuna sahip düşük moleküler ağırlıklı kitosan filmleri, test edilen suşların çoğuna karşı antimikrobiyal aktivitelere sahipti. [ 30 ]
          EO'lar ve kimyon, karanfil ve elecampane'nin fonksiyonel özleri E. _ coli , S. typhimurium , B . Cereus , S. _ Aureus , L. _ monositojenler Karanfil EO'su ile eklenen kitosan filmleri, 500 mg/L'lik MİK'lerle en iyi inhibitör etkileri göstermiştir. [ 31 ]
          3 baharat EO'su Enterobacteriaceae , S. _ aureus , Pseudomonas sp., Laktik asit bakterileri, Brocithrix thermosphacta Karanfil EO, test edilen mikroorganizmalara karşı en etkili olandı. [ 32 ]
          Ayrı bir pencerede aç
          Git: 3. Kekik


          Lamiaceae familyasına ait kekik ( Origanum vulgare ), uzun süredir yemeklere çeşni ve tatlandırıcı olarak kullanılmaktadır. Kekik yağındaki antimikrobiyal aktivitelerle ilişkili ana bileşenlerin karvakrol ve timol olduğu kanıtlanmıştır [ 33 ].

          3.1. Kekiğin Antimikrobiyal Aktiviteleri
          Babacan ve ark. [ 34 ] kekik ekstraktının çeşitli Salmonella serotiplerine karşı antimikrobiyal aktivitelerini bakteri üremesini disk difüzyon yöntemiyle değerlendirerek değerlendirdi. Sonuçlar kekik DIZ'lerinin Salmonella gallinarum ( S. gallinarum ), Salmonella enteritidis ( S. enteritidis ) ve S. typhimurium için sırasıyla 15, 19 ve 16 mm olduğunu gösterdi. Santoyo ve ark. [ 35 ] , altı mikroorganizma suşuna ( S. aureus ,Bacillus subtilis ( B. subtilis ) , E. koli , P. _ aeruginosa , C. _ albicans ve Aspergillus niger ( A. niger )), disk difüzyon ve brot seyreltme yöntemleri kullanılarak. Sonuçlar, süperkritik sıvı ekstraksiyon fraksiyonlarının hepsinin test edilen mikroorganizmalar üzerinde antimikrobiyal etki gösterdiğini ve en verimli fraksiyonun 150 bar ve 40 °C'de %7 etanol ile elde edildiğini göstermiştir. De Souza ve ark. [ 36] ısıtmanın (60, 80, 100 ve 120 °C sıcaklıklarda, her biri 1 saat süreyle) kekik EO'nun 9 mikroorganizma suşuna ( C . albicans , Candida krusei ( C . albicans , Candida krusei ) karşı antimikrobiyal aktiviteleri üzerindeki etkilerini değerlendirdi ( C. krusei ) , Candida tropicalis ( C. tropicalis ) , B. cereus , E. coli , S. aureus , Yersinia enterocolitica ( Y. enterocolitica ) , S. enterica veSerratia marcescens ( S. marcescens )), katı ortam difüzyon prosedürü kullanılarak. Sonuçlar, ısıtma işleminin EO'nun antimikrobiyal aktiviteleri üzerinde önemli bir etki göstermediğini, ısıtılmış EO'nun DIZ'leri ve MIC'lerinin oda sıcaklığında tutulan EO'nunkine yakın olduğunu gösterdi (MIC'ler 10 ila 40 μL/mL arasında).

          Kekik, C. albicans suşlarının [ 37 ] mantar zarlarındaki sterollere bağlanabilir , ancak diğer mikroorganizmalar üzerindeki kesin etki mekanizmaları daha fazla çalışılacaktır. Kekiğin ana bileşenlerinden biri olan karvakrol, küçük katyonların geçirgenliğini değiştirerek hücre zarları ile etkileşime girebilir [ 38 ]. EO ve kekik özlerindeki kimyasal bileşikler karmaşık olduğundan, farklı hücre hedefleri yoluyla mikroorganizmaları inhibe edebilirler.

          3.2. Kekik ve Diğer Baharatların Antimikrobiyal Aktivitelerinin Karşılaştırılması
          Özcan ve ark. [ 39 ] altı küfe ( Fusarium oxysporum f. sp. Phaseoli , Macrophomina Phaseoli ( M. Phaseoli ), Botrytis cinerea ( B. cinerea ), Rhizoctonia solani ( R. solani ), Alternaria solani'ye ( A. solani ) ve Alternaria parasiticus ( A. parasiticus )). Sonuçlar, misel büyümesinin kültür ortamında %10 kekik kaynatma ile %100 inhibe edildiğini gösterdi. Ai-Turki ve ark. [ 40] dört bitkinin sulu ekstraktlarının E. coli'ye karşı antimikrobiyal aktivitelerini test etti . coli ve B. _ disk difüzyon yöntemini kullanarak subtilis . Kekik özü, diğer üç baharat özüyle karşılaştırıldığında iki bakteri üzerinde en iyi antibakteriyel etkileri gösterdi ve B . subtilis, E'den daha fazla hassasiyet gösterdi . koli . Marques ve ark. [ 41 ] kekik ve mercanköşkün EO'larının S. aureus'a karşı antimikrobiyal aktivitelerini değerlendirdi . disk difüzyon yöntemi kullanılarak kümes hayvanı etinden izole edilen aureus ve mikrodilüsyon tekniği kullanılarak MIC'ler ve MBC'ler test edildi. HepsiS. aureus suşları, 6.25 ila 25 μL/mL arasında değişen MIC'ler ile kekik EO'ya duyarlıydı, ancak izolatların dördü ampisiline ve biri tetrasikline dirençliydi. Bozin ve ark. [ 42 ] , delikli plaka agar difüzyon yöntemini kullanarak 13 bakteri suşuna karşı 3 baharat EO'sunun antimikrobiyal aktivitelerini ve mikrodilüsyon tekniği ile 6 mantarı araştırdı. Sonuçlar, en etkili antibakteriyel aktivitelerin, çok dirençli P. aeruginosa ve E. coli suşlarında bile kekik EO tarafından ifade edildiğini gösterdi . koli . Viuda-Martos ve ark. [ 43 ] altı baharattan elde edilen EO'ların altı bakteriye ( Lactobacillus curvatus ( Lactobacillus curvatus ) karşı antimikrobiyal aktivitelerini inceledi .L. curvatus ), Lactobacillus sakei ( L. sakei ), Staphylococcus carnosus ( S. carnosus ), Staphylococcus xylosus ( S. xylosus ), Enterobacter gergoviae ( E. gergoviae ) ve Enterobacter amnigenus ( E. amnigenus )), disk difüzyonu kullanılarak yöntem. Kekik EO, 35,29 mm ( S. xylosus ) ila 57,90 mm ( E. amnigenus ) arasında değişen DIZ'lerle test edilen bakterilere karşı en etkili olanıydı . Santurio ve ark. [ 44 ] , sekiz baharatın EO'larının E. coli'ye karşı antimikrobiyal aktivitelerini bildirdi .et suyu mikrodilüsyon tekniği kullanılarak MIC'leri belirleyerek kümes hayvanları ve sığır dışkısından izole edilen coli suşları. Sonuçlar, tüm E'ye karşı en etkili olduğunu gösterdi . Çalışmada E. coli suşları kekik EO idi. Hüsrev ve ark. [ 45 ] , sıvı makrodilüsyon yöntemini kullanarak MIC'leri ve minimum fungisidal konsantrasyonları (MFC'ler) belirleyerek vulvovajinal kandidiyazlı hastalardan izole edilen Candida glabrata'ya ( C. glabrata ) karşı Artemisia sieberi ve kekik EO'larının antifungal aktivitelerini araştırdı . Sonuçlar, EO'ların test edilen tüm C'yi inhibe ettiğini gösterdi . glabratakekik için 0,5 ila 1100 μg/mL (ortalama: 340,2 μg/mL) arasında değişen MIC'ler ile konsantrasyona bağlı olarak izole eder. Dal Pozzo ve ark. [ 46 ] 7 baharat EO'sunun antimikrobiyal aktivitelerini ve bu baharatların karvakrol, timol, sinnamaldehit ve sineol gibi bazı çoğunluk bileşenlerinin 33 Staphylococcus spp. Et suyu mikrodilüsyon yöntemini kullanarak MIC'leri ve MBC'leri belirleyerek süt keçisi sürülerinden izolatlar. Kekik ve kekik, EO'lar arasında eşit derecede güçlü antimikrobiyal aktivitelere sahipti. Santos ve ark. [ 47 ] dört baharatın S. aureus ve E. coli gibi birkaç bakteriye karşı antimikrobiyal aktivitelerini değerlendirdi . colivongole ve bakteri standardı ATCC'den izole edildi (Amerikan Tipi Kültür Koleksiyonu) : E. coli , S. aureus ve Salmonella choleraesuis ( S. choleraesuis ) difüzyon testi kullanılarak MIC'leri belirlenerek. Kekik ve karanfil EO'ları, test edilen tüm bakterilere karşı antimikrobiyal aktiviteler sergiledi, ancak kekik, 26.7 mm ( E. coli ) ve 29.3 mm ( S. aureus ) gibi daha büyük DIZ'ler sundu. Hyun ve ark. [ 48], kekik de dahil olmak üzere çeşitli baharat EO'larının ürünlerdeki (taze yaprak marul ve turp filizleri) toplam mezofilik mikroorganizmalar üzerindeki antibakteriyel etkilerini daldırma yöntemini kullanarak test etti. Bir kekik türü (ABD'de) EO, kontrole kıyasla taze yaprak marul ve turp filizlerinde azaltılmış toplam mezofilik mikroorganizma düzeylerini korumada en iyi etkileri gösterdi.

          3.3. Kekik'in Gıda Ambalajında ​​Antimikrobiyal Ajan Olarak Uygulanması
          Dört baharatın saf EO'larının ve kitosan-EO filmlerinin L. monositojenler ve E. _ coli, agar difüzyon testi ile in vitro olarak değerlendirilmiştir [ 49 ]. Tek başına ve filmlere dahil edilen EO'ların antimikrobiyal aktiviteleri şu sırayla benzerdi: kekik >> kişniş > fesleğen > anason. 10 °C'de aşılanmış salam numunelerinde kullanıldığında ve beş gün boyunca saklandığında, saf kitosan filmler L' nin 2 log azalmasına yol açtı . monocytogenes , L' nin 3,6–4 log azalması . monocytogenes ve E'nin 3 log redüksiyonu . coli%1 ve %2 kekik EO içeren filmlerde gözlenmiştir.

          Yukarıdaki çalışmaların tümü iyi kalitededir ve kekik, Staphylococcus spp. gibi mikroorganizma suşlarına karşı güçlü antimikrobiyal aktiviteler göstermiştir. ve diğer bazı baharatlarla karşılaştırıldığında daha büyük DIZ'lere ve daha düşük MIC'lere, MBC'lere ve MFC'lere sahip S. aureus izolatları (Tablo 2). Gelecekteki çalışmalar, kekik ve EO'nun gıda endüstrisindeki uygulamasına ve ayrıca olası eylem tarzına odaklanabilir. Tablo 2


          Kekiğin antibakteriyel ve antifungal aktiviteleri.
          kekik özü Salmonella gallinarum , Salmonella enteritidis , S. tifhimuryum Kekik ekstraktı, Salmonella serotipleri üzerinde antibakteriyel etkiye sahipti . [ 34 ]
          EO bakımından zengin kekik fraksiyonları S. aureus , B. subtilis , E. _ koli , P. _ aeruginosa , C. _ albicans , Aspergillus niger Tüm süperkritik sıvı ekstraksiyon fraksiyonları, test edilen tüm mikroorganizmalara karşı antimikrobiyal aktivite göstermiştir. [ 35 ]
          Kekik EO Ç . albicans , Candida krusei , Candida tropikalis , B. Cereus , E. _ coli , S. aureus , Yersinia enterocolitica , S . enterica , Serratia marcescens Isıtma işlemi, EO'nun antimikrobiyal aktiviteleri üzerinde önemli bir etki göstermedi. [ 36 ]
          4 baharat kaynatma F. _ oksisporum f. sp. Phaseoli , Macrophomina Phaseoli , Botrytis cinerea , Rhizoctonia solani , Alternaria solani , Alternaria parasiticus %10 kekik kaynatma seviyesi, kültür ortamında misel büyümesini %100 inhibe etti. [ 39 ]
          4 bitki sulu özü E. _ coli ve B. _ ince Kekik ekstresi, test edilen tüm bakterilere karşı en yüksek antibakteriyel aktiviteye sahipti. [ 40 ]
          Kekik ve mercanköşk EO'ları Kanatlı etinden izole edilen S. aureus . Test edilen tüm izolatlar, kekik EO'suna duyarlıydı. [ 41 ]
          3 baharat EO'su 13 bakteri türü ve 6 mantar Oregano EO en etkili antibakteriyel aktiviteyi göstermiştir. [ 42 ]
          6 baharat EO'su Staphylococcus xylosus , Staphylococcus carnosus , Lactobacillus sakei , Lactobacillus curvatus , Enterobacter gergoviae , Enterobacter amnigenus Kekik EO en etkili olanıydı. [ 43 ]
          8 baharat EO'su E. _ kümes hayvanları ve sığır dışkısından izole edilen coli suşları. Kekik EO, E. coli'ye karşı en etkili olanıydı . [ 44 ]
          Kekik ve A. sieber EO'ları Vulvovajinal kandidiyazlı hastalardan izole edilen Candida glabrata . Kekik EO'nun MIC'leri, test edilen tüm C için 0,5 ila 1100 μg/mL arasında değişmiştir . glabrata izolatları. [ 45 ]
          7 baharat EO'ları ve çoğunluk bileşenleri 33 Staphylococcus spp. izole eder Kekik ve kekik EO'ları, EO'lar arasında eşit ve en güçlü antimikrobiyal aktivitelere sahipti. [ 46 ]
          4 baharat EO'su S. aureus ve E. Vongole ve bakteri standardı ATCC'den izole edilen coli : E. coli , S. aureus , Salmonella choleraesuis Kekik test edilen tüm bakterilere karşı antimikrobiyal aktivite göstermiştir. [ 47 ]
          Çeşitli baharat EO'ları Taze yaprak marul ve turp filizlerinde mikroorganizmalar. Kekik-2 (ABD'de) yağı, toplam mezofilik mikroorganizmaların azaltılmış seviyelerini korumada en etkili yağdı. [ 48 ]
          4 baharatın ve kitosan-EO filmlerinin saf EO'ları L. _ monositojenler ve E. _ coli Hem tek başına hem de filmlere dahil edilen kekik EO, en iyi antimikrobiyal aktivitelere sahipti. [ 49 ]
          Ayrı bir pencerede aç
          Git: 4. Kekik


          Kekik ( Thymus vulgaris ), Lamiaceae familyasına ait, Batı Akdeniz bölgesine özgü bir alt çalıdır. Kekik, yemeklere özel lezzet katmak için yaygın olarak baharat olarak kullanılır. Son zamanlarda yapılan çalışmalarda, kekiğin etkili antimikrobiyal aktivitelere sahip olduğu ve bazı gıdalarda raf ömrünü uzatmak için kullanıldığı bulunmuştur [ 50 ].

          4.1. Kekiğin Antimikrobiyal Aktiviteleri
          Bir çalışma, kekik EO'nun bakterilere ( B. subtilis , S. aureus , Staphylococcus epidermidis ( S. epidermidis ), P. aeruginosa , E. coli ve Mycobacterium smegmatis ( M. smegmatis )) ve mantar suşlarına ( C ) karşı antimikrobiyal aktivitelerini değerlendirdi. albicans ve Candida vajinalis ) [ 51]. Kekik EO, bakteriler için 75 ila 1100 μg/mL ve mantarlar için 80 ila 97 μg/mL arasında değişen MIC'ler ile test edilen mikroorganizma suşlarına karşı etkili bakterisidal ve antifungal aktiviteler göstermiştir. Başka bir çalışmada, dört ontogenetik aşamada hasat edilen kekikten elde edilen EO'lar, bakteriyostatik aktiviteleri test etmek için biyoimpedans yöntemi ve incelemek için plaka sayma tekniği kullanılarak dokuz Gram-negatif bakteri suşuna ve altı Gram-pozitif bakteri suşuna karşı antibakteriyel aktiviteleri açısından test edildi. doğrudan temas yoluyla inhibe edici etkiler [ 52 ]. Sonuçlar, tüm kekik EO'larının test edilen mikroorganizmalara karşı önemli bakteriyostatik aktivitelere sahip olduğunu gösterdi. Ayrıca, dört Thymus türünün ( T. vulgaris) EO'larının antimikrobiyal aktiviteleri, T. serpyllum , T. pulegioides ve T. glabrescens ) agar difüzyon yöntemiyle belirlendi [ 53 ]. T. vulgaris ve T. serpyllum EO'ları , test edilen tüm bakterileri ( P. aeruginosa , Cronobacter sakazakii ( C. sakazakii ), L. innocua ve Streptococcus pyogenes ( S. pyogenes )) ve mayaları ( C. albicans ve Saccharomyces cerevisiae ( S. cerevisiae)) hem orijinal hem de yarı seyreltilmiş konsantrasyonlarda. P. _ aeruginosa , L. _ Innocua ve S. _ pyogenes , Thymus yağlarına yüksek ve eşit derecede duyarlıyken , C. sakazakii , sınırlı duyarlılık sergiledi ve iki maya suşunun duyarlılığı, C'ninkine benzerdi . sakazakii ama S. _ cerevisiae, C'den biraz daha duyarlıydı . albikanlar _

          Kekiğin ana aktif bileşiği, antimikrobiyal etkisini hidrofobik bağ ve hidrojen bağı yoluyla zar proteinlerine bağlanarak ve ardından zarların geçirgenliğini değiştirerek gösteren timoldür [20 ] . Timol ayrıca E. coli'nin hücre içi adenozin trifosfat (ATP) içeriğini azalttı ve hücre dışı ATP'yi arttırdı, bu da plazma zarlarının işlevini bozabilir [ 54 ]. Timolün Gram-pozitif ve Gram-negatif bakterilere karşı farklı etki gösterdiği kanıtlandığından [ 20 ], antimikrobiyal etkinin kesin mekanizmaları daha fazla çalışılmalıdır.

          4.2. Kekik ve Diğer Baharatların Antimikrobiyal Aktivitelerinin Karşılaştırılması
          Al-Turki ve ark. [ 55 ] agar disk difüzyon yöntemini kullanarak kekik, nane, adaçayı, karabiber ve sarımsak hidrosollerinin B. subtilis ve S. enteritidis'e karşı antibakteriyel aktivitelerini bildirdi. Kekik hidrozolü B. subtilis ve S. enteritidis üzerinde adaçayı, nane ve karabiber hidrosollerinden daha önemli inhibitör etkiler göstermiştir ; ortalama DIZ'ler B. subtilis için 20 mm ve S. enteritidis için 15 mm'dir . Başka bir araştırmaya göre, altı bitki hidrosolünün S. aureus , E. coli üzerindeki antimikrobiyal etkileri . koli , S. _ tifhimuryum, P. _ aerugenosa ve C. albicans , hidrosol agar plakaları ve kontrol agar plakaları üzerinde mikrobiyal büyüme bölgeleri belirlenerek test edilmiştir [ 56 ]. Sonuçlar, %15 kekik hidrosolünün E coli'yi tamamen inhibe ettiğini gösterdi . koli ve S. _ typhimurium , ancak C. albicans test edilen hidrosollere karşı etkisizdi. Girova ve ark. [ 57 ], beş bitki EO'sunun psikrotrofik mikroorganizmalara ( P. fluorescens , Pseudomonas putida ( P.putida ) , P. putida ) karşı antimikrobiyal aktivitelerini değerlendirdi .bozulmuş soğutulmuş et ürünlerinden ve bazı referans suşlardan izole edilen fragi , B. thermosphacta ve C. albicans ( P. fluorescens ATCC 17397 , P. putida NBIMCC ( Ulusal Endüstriyel Mikroorganizmalar ve Hücre Kültürleri Bankası) 561, P. aeruginosa ATCC 9027, ve C. albicans ATCC 10231) disk difüzyon ve seri brot seyreltme yöntemi kullanılarak. Sonuçlar, EO'ların antimikrobiyal etkilerinin 37 °C ve 4 °C'de eşit olduğunu göstermiştir. Kekik EO, %0,05 ila %0,8 w / arasında değişen MIC'lerle en yüksek antimikrobiyal aktiviteleri sergiledi.V. _ Hajlaoui ve ark. [ 58 ] agar iyi difüzyon testi kullanarak beş aromatik bitki EO'sunun anti- Vibrio alginolyticus ( V. alginolyticus ) aktivitelerini gözlemledi ve MIC'ler ve MBC'ler sıvı mikrodilüsyon duyarlılık yöntemi kullanılarak incelendi. Kekik EO'nun , 0,078–0,31 mg/mL MIC aralıkları ve 0,31–1,25 mg/mL MBC aralıkları ile diğer 4 EO'ya kıyasla 13 V. alginolyticus suşlarına karşı en etkili olduğu kanıtlanmıştır . Ayrıca, Viuda-Martos ve ark. [ 59 ] bozulmaya neden olan bakteri suşlarının bazı göstergelerinin ( L. innocua , S. marcescens ve P.flüoresan ) ve agar disk difüzyon yöntemi kullanılarak beş baharat EO'sunun konsantrasyon etkileri. Eklenen tüm dozlarda (%100, %50, %25, %12.5 ve %5) sadece kekiğin EO'su test edilen tüm bakteriler üzerinde inhibe edici etkiler göstermiştir. Aliakbarlu ve ark. [ 60 ] iki Gram - pozitif bakteriye ( B. cereus ve L. monocytogenes ) ve iki Gram- negatif bakteriye ( S. typhimurium ve E. coli), agar disk difüzyonu ve mikro-kuyu dilüsyon testi kullanılarak. Kekiğin EO'su, en geniş inhibisyon bölgeleri ve en düşük MIC'ler (0,312–1,25 μL/mL) ile en yüksek antibakteriyel aktiviteleri gösterdi ve B. cereus test edilen en hassas bakteriydi. Hyun ve ark. [ 48 ] , agar disk difüzyon testi ile 18 patojenik bakteri ve 15 bozulmaya neden olan bakteri üzerindeki birkaç EO'nun antibakteriyel etkilerini araştırdı. Sonuçlar, kekik-1 ( T. vulgaris ) EO ve kekik-2 ( T. vulgaris ct linalool ) EO'nun, P. aeruginosa hariç diğer baharatlarla karşılaştırıldığında 18 patojenik bakteri suşuna karşı en yüksek antibakteriyel aktiviteleri sergilediğini gösterdi.. Kekik-1 EO ayrıca bozulmaya neden olan bakteriler üzerinde en iyi antibakteriyel etkileri göstermiştir. Ek olarak, 17 baharat ve bitkinin Shigella suşlarına karşı antimikrobiyal etkileri başka bir çalışmada test edilmiştir [ 61 ]. MİK'ler, et suyu ve agara eklenen kurutulmuş öğütülmüş baharatlar ve otlar ile agar seyreltme yöntemiyle belirlendi ve sonuçlar, Shigella suşları için kekiğin MİK'lerinin %0.5-1 a / h olduğunu gösterdi . Çalışma ayrıca çeşitli sıcaklık kombinasyonları (12, 22 ve 37 °C), pH değerleri (5,0, 5,5 ve 6,0) ve NaCl konsantrasyonları (%1, %2, %3 ve %4 w/ v ) kullanmıştır . ve %1 w / v oranında kekik veya fesleğenin dahil edilmesi veya hariç tutulmasıkekik ve fesleğenin inhibitör etkilerini test etmek için bir Mueller-Hinton agar model sisteminde. Kekik varlığında Shigella flexneri ( S. flexneri ), test edilen 18 kombinasyonun 16'sı için yedi günlük inkübasyon süresi boyunca Koloni Oluşturan Birimler (CFU) geliştirmedi.

          Bazı araştırmalar kekiğin farklı özlerinin antimikrobiyal aktivitelerini karşılaştırmıştır. Martins ve ark. [ 62 ] kekikten hazırlanan infüzyon, kaynatma ve hidroalkolik ekstraktların antimikrobiyal aktivitelerini S. aureus , S. epidermidis , E. coli , Klebsiella spp., P. aeruginosa , Enterobacter aerogenes ( E. aerogenes ), Disk difüzyon halo testi kullanılarak Proteus vulgaris ( P. vulgaris ) ve Enterobacter sakazakii ( E. sakazakii ). Gram pozitif türler için kekik ekstraktları sadeceS. _ epidermidis ve hidroalkolik ekstrakt, benzer aktiviteler gösteren kaynatma ve infüzyon ekstraktlarından daha düşük bir antibakteriyel aktivite göstermiştir. Gram-negatif türler için kekik ekstraktları antimikrobiyal aktiviteyi sırasıyla E. coli olarak göstermiştir . coli > P . vulgaris , P. _ aeruginosa > E . aerojenler = E . sakazaki ; kaynatma ve hidroalkolik ekstraktlar, P hariç bakterilere karşı benzer etkilere sahipti . aeruginosa, en düşük aktivite ise infüzyon ekstraktlarında gözlendi. Ayrıca kekik EO, hidrosol ve propolis ekstraktlarının sucuk yüzeyindeki doğal mikobiyota üzerindeki antifungal etkileri değerlendirilmiştir [ 63 ]. Sonuçlar, potasyum sorbat (%15 w / v , suda), kekik EO'nun (10 mg/mL, dimetil sülfoksit içinde) ve propolis ekstraktının (50 mg/mL, dimetil sülfoksit içinde) 4.88, 2.45 ve Maya-küf sayımında steril su ile karşılaştırıldığında sırasıyla 2,05 log CFU/g.

          Aman ve ark. [ 64 ], kekik de dahil olmak üzere 4 baharattan elde edilen yağlı tohumların polifenolik fraksiyonlarını ve yağ fraksiyonlarını 35 bakteri suşuna karşı antimikrobiyal aktiviteleri açısından analiz etti. Sonuçlar, tüm baharat yağlı tohumlarının yağ fraksiyonlarının polifenolik fraksiyonlarına göre daha aktif olduğunu ve diğer baharat yağlı tohumlarına kıyasla kekik yağı fraksiyonunun en yüksek antibakteriyel aktiviteye sahip olduğunu göstermiştir. Aznar ve ark. [ 65 ] farklı nisin (0,1–3 mmol/L), timol (0,02–1,5 mmol/L), karvakrol (0,02–1 mmol/L) veya cymene konsantrasyonlarında Candida lusitaniae ( C. lusitaniae ) büyümesini inceledi . (0,02–3 mmol/L) sıvılarda (pH = 5, 25 °C) ve ayrıca timolün C. lusitaniae'ye karşı inhibe edici etkinliği değerlendirildidomates suyunda. Timol, karvakrol ve simen, konsantrasyonlar 1 mmol/L'den yüksek olduğunda 25 °C'de 21 günden fazla maya büyümesini tamamen inhibe etti. Timol içermeyen kontrol ile karşılaştırıldığında, timolün C'ye karşı aktivitesi . lusitaniae domates suyunda önemli bulunmuştur.

          Sonuç olarak, kaliteli bir dizi araştırmadan elde edilen sonuçlar, kekiğin S. aureus ve E. coli gibi birçok patojenik ve bozucu bakteri ve mantara karşı etkili antimikrobiyal aktivitelere sahip olduğunu göstermiştir . coli , düşük MİK'li (≤1100 μL/mL) (Tablo 3).

          Tablo 3


          Kekiğin antibakteriyel ve antifungal aktiviteleri.
          kekik EO B. _ subtilis , S. aureus , Staphylococcus epidermidis , P. aeruginosa , E. _ coli , Mycobacterium smegmatis , C. albicans , Candida vajinalis MIC'ler bakteriler için 75 ila 1100 μg/mL ve mantarlar için 80 ila 97 μg/mL arasında değişiyordu. [ 51 ]
          4 ontogenetik aşamadan kekik EO'ları E. _ coli , Proteus mirabilis , Proteus vulgaris , S . Typhimurium , S. _ marcecens , Y. _ enterocolitica , P . fluorescens , Pseudomonas putida , Micrococcus spp ., S. flava , S. aureus , Bacillus licheniformis , Bacillus thuringiensis , L. masumiyet Tüm kekik EO'ları, test edilen mikroorganizmalara karşı önemli antibakteriyel aktivitelere sahipti. [ 52 ]
          4 Thymus türü EO'ları P. _ aeruginosa , Cronobacter sakazakii , L. innocua , Streptococcus pyogenes , C. albicans , Saccharomyces cerevisiae Kekik EO, hem orijinal hem de yarı seyreltilmiş konsantrasyonlarda test edilen tüm bakteri ve mayalar üzerinde en etkili olanıydı. [ 53 ]
          5 baharat hidrosolleri B. _ subtilis ve S. _ enteritidis Kekik hidrosolü adaçayı, nane ve karabiberden daha etkiliydi. [ 55 ]
          6 bitki hidrosolleri S. aureus , E. koli , S. _ Typhimurium , P. _ aeruginosa , C. _ albikanlar Kekiğin %15 hidrosol konsantrasyonu E. coli'yi tamamen inhibe etmiştir . koli ve S. _ tihimüryum . [ 56 ]
          5 bitki EO'su P. _ floresan , P . putida , Pseudomonas fragi , Brochothrix thermosphacta C. albicans , P. _ aeruginosa Kekik EO, %0,05 ila %0,8 w / v arasında değişen MIC'ler ile en yüksek antimikrobiyal aktiviteyi göstermiştir . [ 57 ]
          5 aromatik bitki EO'su 13 Vibrio alginolyticus suşu Kekik EO'sunun MIC'leri 0,078 ila 0,31 mg/mL arasında ve MBC'leri 0,31 ila 1,25 mg/mL arasında değişmiştir. [ 58 ]
          5 baharat EO'su L. _ masumiyet , S. _ marcescens , P. _ floresan Sadece kekik EO, eklenen tüm dozlarda test edilen tüm bakteriler üzerinde inhibisyon etkileri gösterdi. [ 59 ]
          4 baharat EO'su B. cereus, L. monocytogenes, S. typhimurium, E. coli MICs of thyme EO ranged from 0.312 to 1.25 μL/mL. [60]
          Various EOs 18 pathogens and 15 spoilage bacteria Thyme EO showed the strongest antibacterial activities against spoilage bacteria. [48]
          17 spices and herbs Shigella sonnei and Shigella flexneri MICs of thyme ranged from 0.5% to 1% (w/v) depending on the Shigella strains used. [61]
          Thyme infusion, decoction and hydroalcoholic extracts S. aureus, S. epidermidis, E. coli, Klebsiella spp., P. aeruginosa, Enterobacter aerogenes, P. vulgaris, Enterobacter sakazakii Decoction presented the most pronounced effects. [62]
          Thyme EO, hydrosol and propolis extracts Natural mycobiota on the surface of sucuk Thyme EO and propolis extract provided reductions of 2.45 and 2.05 log CFU/g in yeast-mold counts respectively. [63]
          Polyphenolic fractions and oil fractions from 4 spice oilseeds 35 bacterial strains Kekik yağı fraksiyonu, diğer baharat yağlı tohumlarına kıyasla en yüksek antibakteriyel aktiviteye sahipti. [ 64 ]
          Timol, nisin, karvakrol, simen Candida lusitanya Timol, 25 °C'de en az 21 gün boyunca 1 mmol/L'nin üzerindeki konsantrasyonlarda maya büyümesini tamamen inhibe etti. [ 65 ]
          Ayrı bir pencerede aç
          Git: 5. Tarçın


          Lauraceae familyasına ait olan tarçın ( Cinnamomum zeylanicum ), tuzlu yemeklerde, turşularda ve çorbalarda yaygın olarak kullanılmaktadır [ 66 ]. Sinnamaldehit, sinamil asetat ve sinamil alkol, tarçının üç ana bileşiğidir [ 67 ]. Tarçın, antimikrobiyal aktiviteleri nedeniyle kozmetik veya gıda ürünlerinde de kullanılır [ 11 ] ve ayrıca inflamasyon, gastrointestinal bozukluklar ve idrar yolu enfeksiyonları gibi hastalıkları tedavi etmek için sağlığı geliştirici maddeler olarak kullanılır [ 68 , 69 ].

          5.1. Tarçının Antimikrobiyal Aktiviteleri
          Bazı çalışmalarda tarçının antimikrobiyal aktiviteleri değerlendirilmiştir. Gupta ve ark. [ 70 ] , agar kuyusu difüzyon yöntemiyle tarçın ekstraktının (%50 etanol) ve EO'nun antimikrobiyal aktivitelerini 10 bakteri ve 7 mantara karşı karşılaştırdı. Tarçın EO, test edilen mikroorganizmalara karşı tarçın ekstraktından daha etkiliydi ve MIC'ler %1,25 ile %5 v / v arasında değişiyordu . Tarçın EO, B üzerinde en güçlü etkiyi yaptı . bakteriler arasında cereus ve Rhizomucor sp. mantarlar arasında. Tarçın özü B'ye karşı en yüksek aktiviteyi göstermiştir . bakteriler arasında cereus ve Penicillium sp. mantarlar arasında. Ceylan ve ark. [ 71] tarçın, sodyum benzoat, potasyum sorbat ve bunların kombinasyonlarının E. coli üzerindeki antibakteriyel etkilerini test etti . coli elma suyunda 8 ve 25 °C'de. Sonuçlar, %0,3 a / h tarçının E. coli üzerinde 1,6 log CFU/mL azalma sağladığını gösterdi . 8 °C'de coli ve 25 °C'de 2,0 log CFU/mL azalma. Tarçın, E. coli üzerinde sodyum benzoat ve potasyum sorbat ile sinerjistik etkilere sahipti . 8 ve 25 °C'de coli . Son zamanlarda, tarçın EO ve lipozom kapsüllü tarçın EO'nun metisiline dirençli S. aureus üzerindeki anti-biyofilm etkileri(MRSA), taramalı elektron mikroskobu ve lazer taramalı konfokal mikroskopi analizleri [ 72 ] ile bir çalışmada değerlendirildi . Tarçın EO, MRSA'ya karşı etkili antibakteriyel aktiviteye ve belirgin anti-biyofilm aktiviteye sahipti. Lipozomların mevcudiyetinde tarçın EO'nun stabilitesi ve hareket süresi daha da iyileştirildi.

          Tarçının ana bileşeni olan sinnamaldehit, hücre duvarı biyosentezini, zar fonksiyonunu ve spesifik enzim aktivitelerini inhibe ettiği için mikroorganizmalar üzerinde antimikrobiyal etkilere sahiptir. Sinnamaldehitin daha spesifik hücresel hedeflerinin hala ayrıntılı olarak çalışılması gerekmektedir [ 73 ].

          5.2. Tarçın ve Diğer Baharatların Antimikrobiyal Aktivitelerinin Karşılaştırılması
          Mvuemba ve ark. [ 74 ] dört baharatın (tarçın, zencefil, küçük hindistan cevizi ve yaban turpu) sulu ekstraktlarının çeşitli bozulma patojenlerinin ( A. niger , Fusarium sambucinum ( F. sambucinum ), Pythium sulcatum ( P . sulcatum ) ve Rhizopus stolonifera ( R. stolonifera )) . 0.05 g/mL konsantrasyonda, tarçın özü A'yı tamamen inhibe etti . nijer ve P. _ sulcatum , 0,10 ve 0,15 g/mL düzeyinde iken F .sambusinum ve R. _ stolonifer sırasıyla tamamen inhibe edilmiştir. Wang ve ark. [ 75 ] beş bitki sulu ekstraktının beş bakteri ( S. aureus , Lactobacillus sp., B. thermosphacta , Pseudomonas spp. ve E. coli ) üzerindeki antibakteriyel etkilerini aerobik plaka sayımı yöntemi ve disk difüzyonu ile test etti. Tarçın sulu özü, test edilen tüm mikroorganizmaları %1 a / h konsantrasyonunda inhibe eden tek özdü . İnhibitör etkiler, ekstrakt konsantrasyonlarının %1'den %5'e çıkarılmasıyla daha güçlüydü.w / v . Aynı şekilde altı baharatın (fesleğen, karanfil, kakule, tarçın, hardal ve kekik) hidrosollerinin beş mikroorganizmaya ( S. aureus , E. coli , S. typhimurium , P. aeruginosa ve C ) karşı antimikrobiyal aktiviteleri albicans ) test edilmiştir [ 56 ]. Tarçın hidrosolünün inhibisyon yüzdesi, test edilen mikroorganizmalara karşı %5 v / v hidrosolde %10–33,8, %10 v / v hidrosolde %10–66,5 ve %15 v / v hidrosolde %10–100 olmuştur.Ç . albikanlar _ Ayrıca, S. aureus tarçın hidrosolüne karşı en hassas suş iken, P. aeruginosa en az duyarlı suştu. Ağaoğlu ve ark. [ 76 ] et ürünlerinde kullanılan altı baharatın dietil eter ekstraktlarının sekiz bakteri suşuna ( S. aureus , K. pneumonia e, P. aeruginosa , E. coli , Enterococcus faecalis ( E. faecalis ), M ) karşı antimikrobiyal aktivitelerini inceledi. smegmatis , Micrococcus luteus ( M. luteus ) veC. albicans ), disk difüzyonu ile. Test edilen tüm baharatlar arasında sadece tarçın, test edilen tüm mikroorganizmalara karşı inhibitör aktivite göstermiştir. S. aureus ve C. albicans tarçına en duyarlı iken , E. coli en azdı. Keskin ve ark. [ 27 ] 12 bitki türünün etil asetat, aseton ve metanol ekstraktlarının 8 bakteri ve 2 mantar türü üzerindeki antimikrobiyal etkilerini disk deneyi kullanarak araştırdı. Tarçın metanol özü, test edilen tüm mikroorganizmalar üzerinde antimikrobiyal etkiler gösterirken, etil asetat özü, P hariç test edilen mikroorganizmalara karşı inhibisyon gösterdi . aeruginosa veR. _ rubra ve aseton özü, R dışında test edilen mikroorganizmalara karşı inhibisyon gösterdi . . _ Revati ve ark. [ 77 ] yedi Hint baharatı etanol ekstraktının agar kuyusu difüzyon yöntemiyle insan klinik örneklerinden izole edilen Enterococci'ye (215 enterokok suşu dahil) karşı antimikrobiyal aktivitelerini araştırdı. Tarçının ham etanol ekstresi, Enterococci'nin tüm klinik izolatlarına karşı en etkili olanıdır .31 ila 34 mm arasında değişen DIZ'ler ile. Ayrıca, 8 baharat EO'sunun 6 bakteri türüne ve 10 mantar türüne karşı antimikrobiyal aktiviteleri, disk difüzyon testi kullanılarak yapılan bir çalışmada test edildi ve MIC'ler, agar seyreltme testi kullanılarak belirlendi [78 ] . Tarçın EO, 0,015–2,0 mg/mL MIC aralıkları ile incelenen tüm baharatlar arasında test edilen tüm mikroorganizmalar üzerinde en güçlü inhibisyon etkilerine sahipti. Bakterilerle karşılaştırıldığında, mantarlar tarçın EO'ya daha duyarlıydı.

          Toplu olarak, iyi kalitede bahsedilen tüm çalışmalar, tarçının MRSA ve A gibi çok çeşitli türleri kapsayan antimikrobiyal aktiviteler gösterdiğini göstermiştir . nijer , düşük MIC'lerde (Tablo 4), tarçının gıda endüstrisinde uygulama yoluyla sağlık yararları sağlama konusunda büyük bir potansiyele sahip olduğunu belirtir.

          Tablo 4


          Tarçının antibakteriyel ve antifungal aktiviteleri.
          Tarçın özü ve yağı 7 gram pozitif bakteri, 3 gram negatif bakteri ve 7 mantar Tarçın yağı, %1,25 ile %5 v / v arasında değişen MIC'ler ile tarçın özünden daha etkiliydi . [ 70 ]
          Tarçın, sodyum benzoat, potasyum sorbat E. _ coli E. _ coli, %0,3 tarçın ile 8 °C'de 1,6 log CFU/mL ve 25 °C'de 2,0 log CFU/mL azaltıldı. [ 71 ]
          Tarçın yağı ve lipozom kapsüllü tarçın yağı Metisiline dirençli Staphylococcus aureus (MRSA) Tarçın yağı, MRSA'ya karşı etkili antibakteriyel aktiviteye ve belirgin anti-biyofilm aktiviteye sahipti. [ 72 ]
          4 baharat sulu özleri A. _ nijer , Fusarium sambucinum , Pythium sulcatum , Rhizopus stolonifer 0,05 g/mL tarçın özü A'yı tamamen inhibe etti . nijer ve P. _ sulcatum , 0.10 g/mL tarçın özü F'yi tamamen inhibe etti . sambusinyum . [ 74 ]
          5 bitki sulu özleri S. aureus , Lactobacillus sp ., B. termosfakta , Pseudomonas spp. , E. coli Tarçın sulu ekstresi, test edilen tüm mikroorganizmaları %1'lik konsantrasyonda inhibe etti. [ 75 ]
          6 baharat hidrosolleri S. aureus , E. coli , S. typhimurium , P. aeruginosa , C. albikanlar İnhibisyon yüzdesi, %5 tarçın hidrosolünde %10 ila %33.8 arasında değişmiştir. [ 56 ]
          6 baharat dietil eter özü S. aureus , K. pnömoni , P. _ aeruginosa , E. _ coli , Enterococcus faecalis , M . smegmatis , Micrococcus luteus , C. albikanlar Tarçın, test edilen tüm mikroorganizmalara karşı inhibe edici aktivitelere sahipti. [ 76 ]
          12 bitkiden etil asetat, aseton ve metanol özleri K. pneumonia , B. megaterium , P. aeruginosa , S. aureus , E . coli , E. cloacae , C. xerosis , S. faecalis , K. marxianus , R. rubra Tarçının metanol özü, test edilen tüm mikroorganizmalara karşı antibakteriyel aktivite göstermiştir. [ 27 ]
          7 Hint baharatı etanol özü 215 enterokok suşu Tarçının ham etanol özü, tüm klinik izolatlara karşı en etkili olmuştur. [ 77 ]
          8 baharat EO'su B. _ Cereus , E. _ koli , L. _ monositojenler , S. _ yükseldi , P . fluorescens , S. aureus , Candida lipolytica , Hanseniaspora uvarum , Pichia membranaefaciens , Rhodotorula glutinis , Schizosaccharomyces pombe , Zygosaccharomyces rouxii , A. flavus , Aspergillus versicolor , A. parasiticus , Fusarium moniliforme Tarçın EO, 0,015 ila 2,0 mg/mL arasında değişen MIC'lerle en güçlü inhibisyon etkilerine sahipti. [ 78 ]
          10 baharat EO'su B. _ Cereus , B. _ subtilis , E. _ coli , K. pneumoniae , L. monositojenler , P. _ aeruginosa , S. aureus , S. enterica , S. marcencens , Y. enterocolitica Tarçın EO, test edilen tüm bakteri suşlarını inhibe etmede etkili olmuştur. [ 79 ]
          Ayrı bir pencerede aç
          Git: 6. Kimyon


          Kimyon ( Cuminum cyminum ), Apiaceae familyasına ait aromatik bir bitkidir. Kimyon, Orta Doğu'daki gıdaların bir bileşeni olarak eski zamanlardan beri kullanılmaktadır ve kimyon tohumları Hindistan'da uzun süredir antiseptik ve dezenfektan olarak kullanılmaktadır [ 80 ]. Cuminaldehyde, cymene ve terpenoidler, kimyon EO'larının başlıca biyoaktif bileşenleridir [ 81 ]. 6.1. Kimyonun Antimikrobiyal Aktiviteleri


          Bir çalışmada, kimyon EO'nun E. coli'ye karşı antimikrobiyal aktiviteleri . coli , S. aureus , S. faecalis , P . aeruginosa ve K. pneumoniae agar difüzyon ve seyreltme yöntemleriyle araştırıldı [ 81 ]. E. _ coli , S. aureus ve S. faecalis, çeşitli kimyon EO dilüsyonlarına duyarlıyken , P. aeruginosa ve K. _ pnömonidirençliydiler. Başka bir çalışmada, kimyon tohumları EO'nun gıda örneklerinden izole edilen 1230 mantara karşı antifungal aktiviteleri test edilmiştir [ 82 ]. EO, mantar türlerinin çoğu için mantar öldürücüydü ve R. stolonifer hariç tüm 19 gıda kaynaklı mantar suşuna karşı MIC'de (0,6 μL/mL) geniş bir mantar toksisitesi yelpazesi uyguladı . Ayrıca, Abd El Mageed ve ark. [ 83 ], kimyon tohumlarının E. coli'ye karşı antimikrobiyal aktiviteleri üzerindeki EO üzerindeki mikrodalgaların etkilerini araştırdı . coli , S. aureus , P . aeruginosa , A. _ nijer , A. _ parazit veÇ . disk difüzyon yöntemi kullanılarak albicans . Hem mikrodalga hem de geleneksel (fırında) kavrulmuş kimyon yağları, test edilen mikroorganizmalar üzerinde benzer antimikrobiyal etkilere sahipti ve ham yağlardan daha etkiliydi. Rıza ve ark. [ 80 ] ã-ışınlamasının (10 ve 25 kGy) kimyonun E. coli'ye karşı antibakteriyel aktiviteleri üzerindeki etkilerini inceledi . koli , P. _ aeruginosa , B. _ cereus ve S. aureus, agar kuyusu difüzyon yöntemi ve disk difüzyon yöntemi ile. Sonuçlar, kimyon EO'nun test edilen bakteriler üzerinde antibakteriyel etkiler gösterdiğini ve kimyon tohumlarına ã-ışınlamanın (10 ve 25 kGy) kimyonun antimikrobiyal aktiviteleri üzerinde önemli bir etkisinin olmadığını gösterdi.

          6.2. Kimyon ve Diğer Baharatların Antimikrobiyal Aktivitelerinin Karşılaştırılması
          Chaudhry ve ark. [ 84 ] 3 baharatın sulu infüzyonlarının ve sulu kaynatmalarının antibakteriyel etkilerini disk difüzyon testi ile görünüşte sağlıklı bireylerin ağız boşluklarından izole edilen 11 cinse ait 188 bakteri üzerinde belirlemiştir. Sulu kimyon kaynatma, test edilen bakteri suşlarının %73'ü üzerinde inhibe edici etkiler gösterdiği için en yüksek antimikrobiyal aktivitelere sahipti. Kimyon EO ayrıca bildirildiği gibi bazı baharat EO'larından daha etkiliydi. Iacobellis ve ark. [ 85 ] kimyon ve Carum carvi L.'nin EO'larının E. coli ve Pseudomonas , Clavibacter , Curtobacterium , Rhodococcus , cinslerine karşı antimikrobiyal aktivitelerini değerlendirdi.Agar difüzyon testi kullanılarak Erwinia , Xanthomonas , Ralstonia ve Agrobacterium . Kimyon EO , test edilen en yüksek seviye olan 8 μL EO'ya dirençli olan Pseudomonas viridiflava dışında hem Gram-pozitif hem de Gram-negatif bakteriler üzerinde antibakteriyel etkiler göstermiştir . Özcan ve ark. [ 86 ] dokuz baharat EO'sunun üç konsantrasyonda (%1, %10 ve %15 v / v ) S. typhimurium , B. cereus , S. aureus , E. faecalis , E. koli . Y. enterocolitica ,S. cerevisiae , Candida rugosa , Rhizopus oryzae ve A. niger . Sonuçlar, kimyon EO'nun test edilen tüm bakteri türlerinin yanı sıra S. coli'ye karşı etkili olduğunu gösterdi . mantarlar arasında cerevisiae ve Candida rugosa . Stefanini ve ark. [ 87 ] DIZ'leri belirleyerek baharatların (rezene tohumları, dereotu, kimyon ve kişniş) EO'larının antimikrobiyal aktivitelerini analiz etti. Sonuçlar, kimyonun E. coli'ye karşı etkili olduğunu gösterdi . koli , P. _ aeruginosa ve Salmonellasp. sırasıyla 18, 10 ve 23 mm DIZ'ler ile. Başka bir çalışmada, altı baharatın EO'larının L. curvatus , L. sakei , S. carnosus , S. xylosus , E. gergoviae ve E. amnigenus'a karşı antimikrobiyal aktiviteleri , agar disk difüzyon yöntemi kullanılarak değerlendirildi [ 43 ]. Kimyon EO, 31,23 mm ( L. sakei ) ile 38,17 mm ( E. gergoviae) arasında değişen DIZ'lerle test edilen bakterilere karşı ikinci etkili olmuştur .). Ayrıca, başka bir çalışma, beş baharatın EO'larının farklı mikroorganizma türlerine karşı antimikrobiyal aktivitelerini disk difüzyon yöntemiyle değerlendirdi ve bitkiler ile antibiyotikler arasındaki in vitro olası etkileri tartıştı [88 ] . Kimyon, test edilen tüm bakteri ve mantarları inhibe etti. Kimyonun gentamisin, sefalotin ve seftriakson ile uygulanması, Pseudomonas pyocyaneus ( P. pyocyaneus ) ve Aeromonas hydrophila'ya ( A. hydrophila ) karşı sinerjistik etkiler gösterdi, ancak test edilen diğer bakterilere karşı antagonistik etkiler gösterdi . Benzer şekilde, bazı baharat EO'larının altı gıda kaynaklı bakteriye karşı antibakteriyel aktiviteler üzerindeki olası sinerjistik etkileşimleri - B.Cereus , L. _ monocytogenes , M. luteus , S. aureus , E. coli ve S. typhimurium — mikro sıvı seyreltme, dama tahtası titrasyonu ve zaman öldürme yöntemleriyle değerlendirildi [ 89 ]. Sonuçlar, kişniş ve kimyon tohumu yağı kombinasyonunun antibakteriyel aktiviteler üzerinde sinerjistik etkileşimler sergilediğini gösterdi.

          Sonuç olarak, kimyonun E. coli gibi çeşitli mikroorganizmalar üzerinde antimikrobiyal etkileri olmuştur . coli , S. aureus ve S. düşük konsantrasyonlarda dışkı (Tablo 5). Gelecekte, kimyonun ve ana bileşenleri olan cuminaldehit ve simenin diğer mikroorganizmalar üzerindeki antimikrobiyal etki mekanizmaları daha fazla çalışılmalıdır.

          Tablo 5


          Kimyonun antibakteriyel ve antifungal aktiviteleri.
          kimyon E. _ coli , S. aureus , S . dışkı , P . aeruginosa , K. _ pnömoni E. _ coli , S. aureus ve S. faecalis , çeşitli kimyon EO dilüsyonlarına karşı duyarlıydı. [ 81 ]
          Kimyon tohumları EO Gıda örneklerinden elde edilen 1230 mantar izolatı EO, 0.6 μL/mL MIC'de mantar türlerinin çoğuna karşı fungisidal olmuştur. [ 82 ]
          Kimyon tohumları EO'ları E. _ coli , S. aureus , P . aeruginosa , A. _ nijer , A. _ parazit , C. _ albikanlar Hem mikrodalga hem de geleneksel (fırında) kavrulmuş kimyon yağları, ham yağlardan daha yüksek etki göstermiştir. [ 83 ]
          kimyon E. _ koli , P. _ aeruginosa , B. _ cereus , S. aureus ã-Kimyon tohumlarına 10 ve 25 kGy ışınlamanın antibakteriyel etkiler üzerinde önemli bir etkisi olmamıştır. [ 80 ]
          Kalonji, kimyon ve haşhaş tohumundan sulu infüzyonlar ve sulu kaynaşmalar Görünüşte sağlıklı bireylerin ağız boşluğundan izole edilen 188 bakteri izolatı Sulu kimyon kaynatma, test edilen bakterilerin %73'ünü inhibe etti. [ 84 ]
          Kimyon ve C. carvi EO'ları E. coli , cins Pseudomonas , Clavibacter , Curtobacterium , Rhodococcus , Erwinia , Xanthomonas , Ralstonia , Agrobacterium Kimyon EO, Pseudomonas viridiflava dışında test edilen tüm bakterilere karşı antibakteriyel aktivite göstermiştir . [ 85 ]
          9 baharat EO'su S. _ Typhimurium , B. _ cereus , S. aureus , E. dışkı , E. _ koli . Y. _ enterocolitica , S. _ cerevisiae , Candida rugosa , Rhizopus oryzae , A. Nijer Kimyon EO , tüm bakteri türlerine ve iki mantara ( S. cerevisiae ve Candida rugosa ) karşı etkiliydi . [ 86 ]
          4 baharat EO'su S. aureus , Salmonella sp ., E. koli , P. _ aeruginosa vb. Cumin EO, E'ye karşı etkiliydi . koli , P. _ aeruginosa ve Salmonella sp. [ 87 ]
          6 baharat EO'su L. _ kıvrımlı , L. _ saki , S. _ karnosus , S. _ xylosus , E. _ Gergoviae , E. _ amnigenus Kimyon EO, test edilen baharatlar arasında ikinci etkili oldu. [ 43 ]
          5 baharat EO'su M. luteus , B. megaterium , Brevibacillus brevis , E. faecalis , Pseudomonas pyocyaneus , M. smegmatis , E. coli , Aeromonas hydrophila , Y. enterocolitica , S. aureus , S. faecalis , S. cerevisiae , Kluvyeromyces fragilis Kimyon, test edilen tüm bakteri ve mantarları inhibe etti ve antibiyotiklerle sinerjistik ve antagonistik etki gösterdi. [ 88 ]
          Kombinasyon halinde 9 baharatın EO'ları B. _ Cereus , L. _ monositojenler , M. _ luteus , S. aureus , E. koli , S. _ tifhimuryum Kişniş/kimyon tohumu yağı kombinasyonu, antibakteriyel aktiviteler üzerinde sinerjistik etkileşimler göstermiştir. [ 89 ]
          Ayrı bir pencerede aç
          Git:

          Yorum yap


          • #6
            Ayurveda ve COVID-19: Psikonöroimmünoloji ve anlam yanıtının buluştuğu yer

            Ravi Philip Rajkumar
            Yazar bilgileri Makale notları Telif hakkı ve Lisans bilgileri Sorumluluk Reddi
            Psikiyatri Bölümü, Jawaharlal Mezuniyet Sonrası Tıp Eğitimi ve Araştırma Enstitüsü (JIPMER), Dhanvantari Nagar Post, Pondicherry 605 006, Hindistan İlişkili Veriler

            Tamamlayıcı Malzemeler
            Git: Soyut

            COVID-19 salgını, genel halkta anksiyete ve depresyon semptomları da dahil olmak üzere yüksek düzeyde psikolojik sıkıntıya yol açtı. Bu tür bir sıkıntı, yüksek viral solunum yolu enfeksiyonları riski de dahil olmak üzere bağışıklık işlevindeki değişikliklerle ilişkilidir. Bu bağlamda, Hindistan hükümeti tarafından “bağışıklık güçlendirici” olarak tanıtılan geleneksel bir tıp sistemi olan Ayurveda'nın olası etkileri, psikonöroimmün mekanizmalar ve Moerman'ın tanımladığı “anlam tepkisi” açısından incelenmektedir. Kılavuzlarında savunulan önlemlerin birçoğunun, ya depresyon ya da anksiyete semptomları üzerindeki doğrudan etkileriyle ya da sembolik anlamlarıyla bağışıklığı olumlu yönde etkileyebildiği bulundu. Öyleyse,

            Anahtar Kelimeler: COVID-19, Psikonöroimmünoloji, Anlam tepkisi, Ayurveda
            Git: 1. Anlam tepkisi ve psikonöroimmünite: Hindistan hükümetinin COVID-19 krizi için Ayurvedik bağışıklığı güçlendirici önlemlerinin analizi

            Bugüne kadar bildirilen 2.400.000'den fazla vaka ve 170.000 ölümle (21 Nisan 2020), COVID-19 salgını, tüm ulusların vatandaşları üzerinde gerçek veya potansiyel etkisi olan küresel bir sağlık krizidir. Bu salgının, özellikle sağlık çalışanları gibi savunmasız gruplarda, ruh sağlığı üzerinde halihazırda önemli bir etkisi olmuştur ( Rajkumar, 2020 ). Kendi başlarına sıkıntıya neden olmanın yanı sıra, bu psikolojik semptomlar, bağışıklık fonksiyonunu olumsuz yönde etkileme potansiyeline sahiptir. Stres, anksiyete ve depresyon gibi psikososyal faktörler, viral üst solunum yolu enfeksiyonlarına karşı artan duyarlılıkla ilişkilidir ( Pedersen ve diğerleri, 2010 ) ve grip aşısına karşı bağışıklık yanıtını etkileyebilir ( Whittaker, 2018).). Bu tür bulgular, psikolojik sıkıntı ile COVID-19 enfeksiyonuna karşı bağışıklık tepkileri arasındaki bağlantının biyolojik olarak makul olduğunu ve daha fazla ilgiyi hak ettiğini göstermektedir.

            Hindistan'da modern tıp uygulaması, nüfusun geniş kesimleri tarafından yaygın olarak kullanılan Ayurveda, Unani ve Siddha gibi yerli tıp sistemleriyle bir arada bulunmaktadır (Shankar ve Patwardhan, 2017 ) . Hindistan hükümeti, COVID-19 krizine yanıt olarak, 16 seçkin vaidyanın ( geleneksel doktorların) görüşüne dayalı olarak geliştirilen “COVID-19 krizi sırasında kişisel bakım için Ayurveda'nın bağışıklığı artırma önlemleri” başlıklı bir dizi kılavuz yayınladı ve onları halka açık hale getirdi ( https://www.ayush.gov.in/docs/123.pdf ). Bu yönergeler, COVID-19'a atıfta bulunularak herhangi bir özel iddiada bulunulmasa da, enfeksiyona karşı bağışıklığı artırmayı amaçlayan on önlemi listeledi.

            Bilimsel bir bakış açısından, bu tür önerileri iki çağdaş modelden elde edilen bilgiler açısından incelemeye değer. İlki olan psikonöroimmünoloji, sinir, endokrin ve bağışıklık sistemleri arasındaki yakın bağlantının kanıtlarına dayanır ve stres ve duygusal bozuklukların enfeksiyona karşı bağışıklık tepkisini modüle edebildiği mekanizmaları açıklar ( Kim ve Su, 2020 ). İkincisi, "anlam tepkisi", Moerman tarafından "plasebo tepkisi" kavramına bir alternatif olarak geliştirilmiştir. Bu modele göre, bir kişinin herhangi bir tedaviye yanıtı, yalnızca ilacın farmakolojik özelliklerine değil, aynı zamanda bu tedaviye yükledikleri anlama da bağlıdır. Bu anlam büyük ölçüde içinde yaşadıkları kültür tarafından şekillenmektedir ( Moerman, 2013).). Bu modellerin her ikisi de - psikonöroimmünoloji ve anlam tepkisi - geleneksel bir "bilimsel" paradigma yoluyla çalışmayan ve birbirini dışlamayan tedavilerin etkisini anlamada değerlidir; “anlamlı” bir müdahale, psikolojik sıkıntı üzerindeki etkileri yoluyla bağışıklık fonksiyonunu değiştirebilir.

            tablo 1 Ayurveda uzmanları tarafından tavsiye edilen ve Hindistan Hükümeti tarafından yayınlanan 10 ölçüte bu paradigmaların uygulanmasını gösterir. tablo 1

            Hindistan Hükümeti'nin önerilen Ayurveda uygulamaları yönergelerinin içerik analizi.
            Gün boyunca ılık su için – +, "vücudu temizlemek" olarak görülüyor
            Günlük yoga pratiği +, stres tepkilerinin, monoamin fonksiyonunun ve parasempatik aktivitenin modülasyonu yoluyla +, fiziksel zindeliği teşvik ettiği görülüyor
            Spesifik baharatların kullanımı – zerdeçal, kişniş, kimyon, sarımsak + , kontrollü çalışmalarda monoamin ve gama-amino bütirik asit nörotransmisyonunun ve depresyonun hafifletilmesinin kanıtı yoluyla +, beslenmenin önemli bir parçası ve "sağlığı geliştiriciler" olarak görülüyor
            Her sabah Chyawanprash (geleneksel bir Ayurvedik hazırlık) alın +, kontrollü çalışmalarda depresyon ve anksiyeteyi azalttığına dair kanıtlar aracılığıyla +, vücudu "gençleştiriyor" olarak görülüyor
            Tulsi (fesleğen), tarçın, karabiber, zencefil, kuru üzümden yapılan bitki çayı için +, kontrollü çalışmalarda depresyon, anksiyete ve streste azalma kanıtı yoluyla +, öksürük ve solunum problemleri için özel bir çare olarak görülüyor
            “Altın süt: (zerdeçallı ılık süt) günde bir veya iki kez + , yukarıdaki "Belirli baharatların kullanımı"na bakın +, "altın" renk sağlığı ve refahı simgeler
            Nazal uygulama - günde iki kez susam yağı / hindistancevizi yağı veya ghee (arıtılmış tereyağı) uygulayın – +, iyileştirici bir madde ve vücut için bir "soğutucu" olarak görülür
            "Yağ çekme terapisi" - ağzı yağla 2-3 dakika çalkalamak ve ardından tükürmek – +, çeşitli rahatsızlıklar için geleneksel bir halk ilacı
            Nane yaprakları veya kimyon tohumu ile buhar inhalasyonu – +, solunum problemlerine karşı etkili olarak görülüyor
            Boğaz tahrişi veya öksürük için bal veya şekerle karıştırılmış karanfil tozu kullanımı – +, boğaz hastalıklarının tedavisi olarak görülür
            Ayrı bir pencerede aç
            Anahtar: +, mevcut; -, mevcut olmayan.

            Monoamin fonksiyonunun modülasyonu, stres ekseni tepkisi ve otonomik aktivite gibi nörobiyolojik mekanizmalar ve ayrıca insan deneklerde kaygı, depresyon ve algılanan stresin azaltılması gibi önerilen beş yöntem için potansiyel bir psikonöroimmün mekanizma tanımlandı (Sarris, 2018 ) . Bu ölçümlerin çağrıştırdığı "anlam tepkisi" açısından, Ayurvedik literatürden ilgili geleneğe dayanan ve genellikle halk uygulamaları tarafından yankılanan sembolik bir anlam, on vakanın hepsinde tespit edilebildi. Bu anlamlar gençleştirici olarak görülen maddelerle, vücudun “temizlenmesiyle”, tıbbi maddelerin yerel olarak uygulanmasıyla, öksürüğe, boğaz ağrısına ve solunum yolu hastalığına karşı özel etkileriyle ve hatta belirli bir rengin terimlerdeki sembolik anlamıyla ilgiliydi. sağlık ve refah (Ali, 1998 , Shrivastava ve diğerleri, 2020 ).

            Bu merceklerden bakıldığında, bu tür geleneksel önlemlerin ruh sağlığını ve bağışıklık fonksiyonunu olumlu yönde etkilemesi mümkündür. Bazıları için, en azından in vitro olarak , psikonöroimmün yolları olumlu bir şekilde modüle edebilen bir hücresel mekanizmanın varsayılan kanıtı zaten var ; diğerlerinde, etki yalnızca psikolojik sıkıntıyı hafifletmedeki veya sağlık, esenlik ve belirli hastalıklara karşı korunma ile ilgili sembolik bir anlam sağlamadaki etkinlik kanıtlarından çıkarılabilir. "Anlam tepkisinin" bağışıklık fonksiyonunu etkileyebileceğine dair doğrudan bir kanıt bulunmamakla birlikte, in vivo olarak bağışıklık-enflamatuar aktivitedeki değişikliklerle ilişkilendirilebilir.mezolimbik ve mezokortikal beyin devreleri üzerindeki etkilerin aracılık ettiği stres, kaygı ve ruh halini azaltmanın yanı sıra ( Oken, 2008 ).

            Bu etkilerin COVID-19 salgını sırasında psikolojik ve bağışıklık işleviyle ilgisi, doğrudan deneysel testler gerektirir ve Hükümetin yönergeleri, bu önlemlerin yalnızca uygun hijyenik önlemlerle yan yana kullanılmasını ve tıbbi bir ortamda bu konsültasyonu tavsiye eder. COVID-19'u düşündüren semptomlar ortaya çıkarsa hemen aranmalıdır. Eğer doğrulanabilirlerse, bu tür etkiler, Ayurvedik ve "biyolojik" zihin-vücut tıbbı modelleri arasında uzlaştırılamaz bir fark olmadığını gösteren antropolojik bakış açılarıyla, psikonöroimmünoloji ve ikisi arasında potansiyel "kayıp bağlantılar" sağlayan anlam tepkisi ile tutarlı olacaktır. . Bu tür açıklayıcı modellerin daha da geliştirilmesi, hastalık salgınları sırasında "geleneksel" tıbbi uygulamaların yararlılığını açıklığa kavuşturabilir.Shankar ve Patwardhan, 2017 ).

            Git: Dipnotlar

            Ek A Bu makalenin tamamlayıcı verileri çevrimiçi olarak https://doi.org/10.1016/j.bbi.2020.04.056 adresinde bulunabilir .


            Git: Ek A. Tamamlayıcı veriler

            Aşağıdakiler, bu makaleye ek verilerdir:
            Ek veriler 1:
            Görmek için buraya tıkla. (216 bayt, xml)


            Git: Referanslar

            • Ayurveda'nın klasik literatüründe Ali M. Rasayana terapisi - bir inceleme. Bull.Hint Enstitüsü. Tarih Med. 1998; 28 :95–110. [ PubMed ] [ Google Akademik ]
            • Kim, SW, Su, KP, 2020. COVID-19'a karşı psikonöroimmunite kullanımı. Beyin, Davranış Bağışıklığı. (Basında). doi: 10.1016/j.bbi.2020.03.025. [ Ücretsiz PMC makalesi ] [ PubMed ]
            • Moerman DE "Plasebo etkisine" karşı: kişisel bir bakış açısı. Tamamlayıcı. Terapi Med. 2013; 21 :125–130. doi: 10.1016/j.ctim.2013.01.005. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Oken BS Plasebo etkileri: klinik yönler ve nörobiyoloji. Beyin. 2008; 131 :2812–2823. doi: 10.1093/beyin/awn116. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Pedersen A., Zachariae R., Bovbjerg DB Psikolojik stresin üst solunum yolu enfeksiyonu üzerindeki etkisi – ileriye dönük çalışmaların bir meta-analizi. psikozm. Med. 2010; 72 :823–832. doi: 10.1097/PSY.0b013e3181f1d003. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Rajkumar RP COVID-19 ve ruh sağlığı: mevcut literatürün gözden geçirilmesi. Asya J. Psikiyat. 2020; 52 doi: 10.1016/j.ajp.2020.102066. [ Ücretsiz PMC makalesi ] [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Sarris J. Psikiyatrik bozuklukların tedavisinde bitkisel ilaçlar: 10 yıllık güncellenmiş derleme. fitoter. Res. 2018; 32 :1147–1162. doi: 10.1002/ptr.6055. [ PubMed ] [ CrossRef ] [ Google Scholar ]
            • Shankar, D., Patwardhan, B., 2017. Yeni Hindistan için AYUSH: vizyon ve strateji. J. Ayurveda Bütünleştirici. Med., 8, 137-139. https://doi.org/j.jaim.2017.09.001. [ Ücretsiz PMC makalesi ] [ PubMed ]
            • Shrivastava, S., Soundararajan, P., & Agarwal, A., 2020. Kronik hastalık yönetiminde Ayurvedik yaklaşım. İçinde: Noland, D., Drisko, J., & Wagner L. (eds), Bütünleyici ve İşlevsel Tıbbi Beslenme Terapisi, 783-798. doi: 10.1007/978-3-030-30730-1_45.
            • Whittaker AC Psikonöroimmünoloji araştırmasında aşılama modeli: bir gözden geçirme. Yöntemler Mol. Biol. 2018; 1781 :309–326. doi: 10.1007/978-1-4939-7828-1_16. [ PubMed ] [ CrossRef ] [ Google Scholar ]

            Yorum yap


            • #7
              Cuminum nigrum (Linn.) ve Centratherum anthelminticum (Linn.) metanolik ekstraktlarının farelerde nörofarmakolojik aktivitelerinin karşılaştırılması

              raana mahmood 1, Rahila İkram 2, Gazala H Rizwani 3, Humera Hatun 4
              üyelikler yıkılmak üyelikler

              • 1Karaçi Tıp ve Diş Koleji, Farmakoloji Bölümü, Karaçi, Pakistan.
              • 2Eczacılık ve Eczacılık Bilimleri Fakültesi, Eczacılık Anabilim Dalı, Karaçi Üniversitesi, Karaçi, Pakistan.
              • 3Eczacılık Fakültesi, Farmakognozi Anabilim Dalı, Hamdard Üniversitesi, Karaçi, Pakistan.
              • 4Eczacılık Fakültesi, Cinnah Kadın Üniversitesi, Karaçi, Pakistan.
              • PMID: 30772794
              Soyut

              Çalışma, Cuminum nigrum (L) ve Centratherum anthelminticum (L) metanolik ekstraktlarının oral dozlarının farelerin nörofarmakolojik aktiviteleri üzerindeki etkilerini gözlemlemek ve araştırmak için yapılmıştır. Cuminum nigrum (L) ve Centratherum anthelminticum'un (L) metanolik özleri, Dimetil sülfoksit (DMSO) yani bir organik çözücü içinde çözünürdü, bu nedenle bu çalışmada kullanıldı. Anksiyolitik ve antidepresan etki taraması, açık alan testi, baş daldırma testi, sabit çubuk testi, kafes geçiş testi, aydınlık ve karanlık kutu ve yüzme kaynaklı depresyon testi kullanılarak yapıldı. Otuz hayvan, her biri 10 hayvandan oluşan üç gruba ayrıldı ve 1 (kontrol, DMSO üzerinde), 2 (Cuminum nigrum (L) metanolik özü üzerinde), 3 (Centratherum anthelminticum (L) metanolik özü üzerinde) olarak numaralandırıldı. Ekstreler ve DMSO, 60 gün boyunca oral olarak uygulandı. Hayvan davranışındaki herhangi bir olası değişiklik, dozun 15., 30. ve 60. günlerinde değerlendirildi. Grup 2 ve 3, sırasıyla açık alan aktivitesinde ve aydınlık ve karanlık kutu testinde anlamlı artış (p<0,001, p<0,01) gösterirken, 60 gün sonra baş daldırma ve kafes geçiş aktivitesinde anlamlı azalma (p<0,01) gözlendi. dozlama. Yukarıdaki bulgulara dayanarak, Centratherum anthelminticum (L) ve Cuminum nigrum (L) ekstraktlarının sedatif etkileri ile antidepresan ve anksiyolitik potansiyele sahip olduğu ileri sürülmektedir. 60 günlük doz uygulamasından sonra baş daldırma ve kafes çaprazlama aktivitesinde (p<0.01) önemli ölçüde azalma gözlendi. Yukarıdaki bulgulara dayanarak, Centratherum anthelminticum (L) ve Cuminum nigrum (L) ekstraktlarının sedatif etkileri ile antidepresan ve anksiyolitik potansiyele sahip olduğu ileri sürülmektedir. 60 günlük doz uygulamasından sonra baş daldırma ve kafes çaprazlama aktivitesinde (p<0.01) önemli ölçüde azalma gözlendi. Yukarıdaki bulgulara dayanarak, Centratherum anthelminticum (L) ve Cuminum nigrum (L) ekstraktlarının sedatif etkileri ile antidepresan ve anksiyolitik potansiyele sahip olduğu ileri sürülmektedir.

              Yorum yap


              • #8
                Ayurveda ve COVID-19: Psikonöroimmünoloji ve anlam yanıtının buluştuğu yer

                Ravi Philip Rajkumar 1
                üyelikler yıkılmak üyelik

                • 1Psikiyatri Bölümü, Jawaharlal Mezuniyet Sonrası Tıp Eğitimi ve Araştırma Enstitüsü (JIPMER), Dhanvantari Nagar Post, Pondicherry 605 006, Hindistan. Elektronik adres: ravi.psych@gmail.com.
                Ücretsiz PMC makalesi Soyut

                COVID-19 salgını, genel halkta anksiyete ve depresyon semptomları da dahil olmak üzere yüksek düzeyde psikolojik sıkıntıya yol açtı. Bu tür bir sıkıntı, yüksek viral solunum yolu enfeksiyonları riski de dahil olmak üzere bağışıklık işlevindeki değişikliklerle ilişkilidir. Bu bağlamda, Hindistan hükümeti tarafından "bağışıklık güçlendirici" olarak tanıtılan geleneksel bir tıp sistemi olan Ayurveda'nın olası etkileri, psikonöroimmün mekanizmalar ve Moerman'ın tanımladığı "anlam tepkisi" açısından incelenmektedir. Kılavuzlarında savunulan önlemlerin birçoğunun, ya depresyon ya da anksiyete semptomları üzerindeki doğrudan etkileriyle ya da sembolik anlamlarıyla bağışıklığı olumlu yönde etkileyebildiği bulundu. Öyleyse,

                Anahtar Kelimeler: Ayurveda; COVID-19; Anlam yanıtı; Psikonöroimmünoloji.

                Yorum yap

                Hazırlanıyor...
                X